III. Säuredrogen.
Reading edition
Unter diesem Namen mögen alle die Drogen zusammengefaßt werden, die niedere aliphatische Säuren, besonders die sog. Pflanzensäuren, oder saure Salze derselben als charakteristische Bestandteile enthalten. Die niederen Fettsäuren der Ameisensäurereihe sind in kleinen Mengen in den verschiedensten Pflanzen als häufige und regelmäßige Stoffwechselprodukte nachgewiesen. Bakterien vermögen sie ebensowohl aus Zucker und anderen Kohlehydraten wie aus Eiweißstoffen zu bilden (das Detail in CZAPEKS Biochemie).
Daß die aliphatischen Säuren, besonders die sog. Pflanzensäuren zu den Kohlehydraten Beziehungen besitzen, kann jetzt keinem Zweifel mehr unterliegen. Wir können uns plausible Vorstellungen davon bilden, wie Zucker im Abbauprozeß in die Säuren übergehen und aus den Säuren umgekehrt Zucker synthetisch entstehen kann. Als Beispiel für den Abbau mag folgendes, von E. FISCHER aufgestelltes Schema dienen:
+
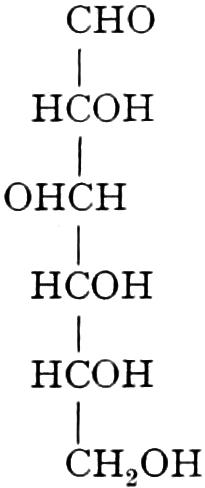

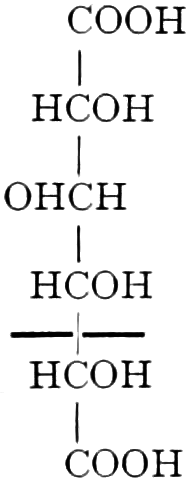
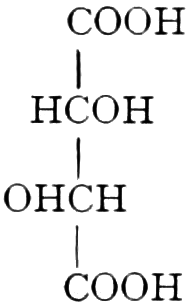
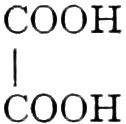
d-Glukose d-Zuckersäure d-Weinsäure d-Oxalsäure
Ferner sei erwähnt, daß es gelungen ist, aus Maltose, Saccharose, Dextrose und Lävulose im Prozesse der sog. Zitronensäuregärung Zitronensäure aufzubauen (WEHMER, BUCHNER, WÜSTENFELD, HERZOG und POLOTZKY). BUCHNER und WÜSTENFELD denken sich den Prozeß in der Weise verlaufend, daß der Zucker zunächst in Kohlensäure und Alkohol gespalten, der Alkohol assimiliert und aus dem Plasma der gealterten Zelle unter dem Einfluß eines proteolytischen Enzyms neben Stickstoffverbindungen Zitronensäure abgespalten wird.
Weniger sicher ist der Übergang von den Pflanzensäuren zu dem Zucker zu verfolgen. Wir sehen zwar, daß die unreifen Früchte reich an Pflanzensäuren sind und daß diese ganz oder fast ganz beim Reifen und Nachreifen verschwinden und an ihrer Stelle Zucker auftritt, ob aber hier (nach LIEBIG) ein direkter Übergang stattfindet wissen wir nicht. Allerdings haben Versuche von C. GERBER an reifenden Früchten zu Vorstellungen geführt, warum Apfelsäure führende Früchte in kalten Klimaten reifen können, aber nicht weinsäurereiche (wie z. B. Trauben): Nur in diesen Früchten ist ein Übergang der Säure in Zucker bei relativ niedriger Temperatur möglich. Noch schwerer wie Apfelsäure und Weinsäure wird Zitronensäure angegriffen. Erst bei c. 30° kommt sie bei Gegenwart von Zucker für die Atmung in Betracht. Zitronen werden durch Lagern (Nachreifen) nicht süß. Doch liegen die Verhältnisse hier wohl weniger einfach als sich dies GERBER denkt. Bemerkenswert ist z. B. auch, daß alle jungen Feigenfruchtstände, bevor sie süß werden, Auszüge geben, die stark nach Caprylsäure riechen, ganz ähnlich wie Cocosfett (TSCHIRCH).
Die niederen Fettsäuren können wir uns ebenso als direkte Assimilationsprodukte der Kohlensäure wie aus Spaltungsprodukten von Kohlehydratresten hervorgegangen denken. Oft entstammen sie dort, wo wir sie in Drogen oder Drogendestillaten antreffen, auch der Zersetzung von Estern ätherischer Öle, denn die Primäröle die wir in der Pflanze antreffen, sind oft Ameisensäure-, Essigsäure-, Buttersäure und Baldriansäure-Ester. Die aliphatischen Säuren treten also auch in die Sekrete ein und den Charakter eines Schutzsekretes besitzt z. B. die Ameisensäure auch bei den Formicae (s. d.).
Die höheren Fettsäuren bilden bekanntlich mit dem Glycerin Ester, die wir Fette nennen und die im Anschluß an das vorstehende Kapitel in einem besonderen Abschnitte behandelt werden sollen.
Eine scharfe Methode zur quantitativen Trennung der verschiedenen, oft gleichzeitig auftretenden Pflanzensäuren existiert nicht, oft macht bereits der qualitative Nachweis der einzelnen Säuren in einem Gemisch Schwierigkeiten. Als Beispiel für eine der brauchbareren Methoden kann die folgende angeführt werden (BERG und GERBER). Die Säuren werden mit Bleizucker gefällt, das Blei wird mit Schwefelwasserstoff entfernt und das Filtrat mit Kalk gesättigt. Die hierbei entstehenden unlöslichen Calciumsalze (A) werden mit Essigsäure behandelt, welche das Calciumoxalat ungelöst läßt, während die essigsaure Lösung Weinsäure und Phosphorsäure aufgenommen haben kann. Auf erstere wird mit MOHLERS Reagens geprüft, auf letztere mit Molybdänlösung. Die löslichen Calciumsalze (B) werden mittelst Ammoniumoxalat vom Kalk befreit, worauf das saure Filtrat auf Citronensäure und Äpfelsäure untersucht wird. Die Citronensäure wird mittels 66proz. Schwefelsäure bei 50–60° in Acetondicarbonsäure übergeführt, letztere wird ausgeäthert. Äpfelsäure kann isoliert werden durch Auskochen der getrockneten Ammoniumsalze mit 95proz. Alkohol, wobei nur Malate in Lösung gehen, während Tartrate und Citrate im Rückstande bleiben. Durch diese Methode hat man z. B. in Mesembryanthemum-Arten, in welchen man früher nur Oxalsäure annahm, Citronensäure, Oxalsäure, Äpfelsäure und Phosphorsäure nachweisen können (EULER, Pflanzenchemie).
Lit. BUCHNER und WÜSTENFELD, Biochem. Zeitschr. 1909, 395. — HERZOG und POLOTZKY, Zeitschr. phys. Chem. 49 (1909), 125. — C. GERBER, Ann. sc. nat. 1897. — TSCHIRCH, Chem. u. Biolog. d. pflanzl. Sekrete. — CZAPEK, Biochemie. — EULER, Pflanzenchemie.
I. Ameisensäuredrogen.
Die Ameisensäure oder Methansäure, H.COOH, findet sich frei und gebunden in den Nadeln der Tanne (ASCHOFF), den Brennhaaren der Nessel, in den Früchten von Tamarindus indica (s. d.), Sapindus Saponaria (GORUP-BESANEZ), Arctostaphyllos, Gingko, Ceratonia (S. 144), im Honig (S. 12), in unreifen Wacholderbeeren, Weintrauben, im Safte von Sempervivum (DÖBEREINER), im Milchsafte von Bassia latifolia (HECKEL und SCHLAGDENHAUFFEN), in der Prozessionsraupe, in Muskeln, Milz und Thymus des Menschen und anderwärts, aber meist nur in sehr geringen Mengen; in größerer nur in den Ameisen (Zusammenstellung bei BERGMANN, Bot. Zeit. 1882, 731).
Formica.
Die geschlechtslosen Arbeiter der gemeinen Waldameise, Formica rufa L., einer durch Europa verbreiteten, in Kolonien lebenden, Nadelholzwälder bevorzugenden Hymenoptere sind ungeflügelt, 4–7 mm lang, mit braunroter Brust und daranansitzenden sechs rotbraunen Beinen versehen, und tragen in dem breit-eiförmigen, fünfgliederigen, bräunlich-schwarzen, durch einen zweigliederigen Stiel mit der Brust verbundenen Hinterleibe eine mit einer scharfen ätzenden, vorwiegend aus einer ziemlich konzentrierten Lösung von Ameisensäure bestehenden Flüssigkeit gefüllte Giftdrüse, deren Inhalt sie bei Angriffen weit fortzuspritzen vermögen.
Die Giftdrüse findet sich bei den Weibchen und Arbeitern stets in der hinteren Region des Hinterleibes (Abdomens) ventral von der Rectalampulle, zwischen Anus und den Geschlechtsorganen. Sie ist ein ziemlich komplizierter Apparat (MEINERT, Forel), an dem man unterscheidet: die eigentliche, das ameisensäurehaltige Gift sezernierende Drüse, das Sammelreservoir (die Giftblase), den ausführenden Abschnitt (mit oder — bei Formica — ohne Stachel) und die accessorische oder Nebendrüse, welche ein anderes öliges Sekret bildet. Die «Giftblasen mit Polster» (Fig. 166 A) finden sich bei den Formiciden, die «Giftblasen mit Knopf» (Fig. 166 B) bei den Myrmiciden (FOREL). Bei beiden Typen zeigt die Giftdrüse einen tubulösen Bau und besteht aus Röhren, deren Wände aus Drüsenzellen gebildet werden. Der das Polster bildende Teil, der die dorsale Decke der Giftblase darstellt, besteht aus einem (z. B. bei Camponotus, dessen Polster nur 2 mm lang ist) bis 20 cm langen, in unzähligen Windungen zusammengelegten Schlauche. Bei den Formiciden, denen der Stachel fehlt, ist der Ausführungskanal breit (Fig. 166 A) und mündet, frei, ohne Stachel, in die Kloake, bei den Myrmiciden ist er schmal und steht mit dem Stachel in Verbindung. Der Giftapparat ist die Hauptverteidigungswaffe der Ameisen. Die stachelfreien Formiciden beißen mit ihren Mandibeln eine Wunde und spritzen in diese das Gift oder senden, wenn sie den Feind nicht erreichen können, das Gift, durch die Bauchpresse ejakuliert (FOREL), ihm entgegen. Stört man einen Haufen von Formica rufa und pratensis, so ergießt sich ein meterweit reichender Sprühregen, der auf der Haut eine leichtere Entzündung hervorruft, wie die Bißwunden. Das Gift ist für die Ameise selbst schädlich und ein von anderen Drüsen sezerniertes alkalisches Sekret dient zu seiner Neutralisation (JANET) — die Ameisenhaufen reagieren alkalisch. Die Analdrüsen sezernieren stark riechende Substanzen (FOREL).
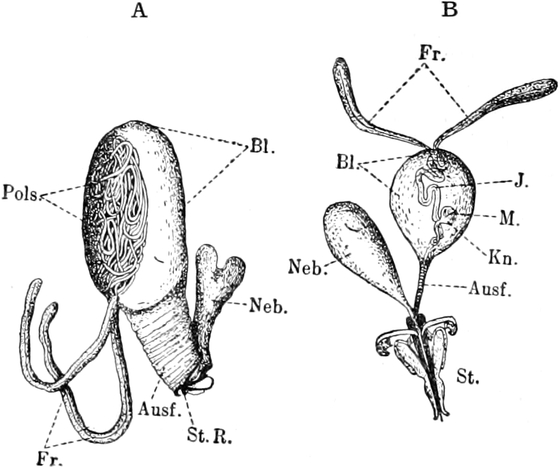
Fig. 166.
Giftapparat A von
Formica rufibarbis
☿; B von
Myrmica laevinodis
☿; Ausf. Ausführgang des Giftapparates, Bl. Sammelblase, Fr. freies Ende der Drüse, J. in die Blasenintima eingeschlossener Teil des Drüsenschlauches, Kn. «Knopf», M. Mündung der Drüse in das Blasenlumen, Neb. Nebendrüse, Pols. «Polster», St. Stachel, St. R. Stachelrudiment.
[Aus
Escherich
, Die Ameise.]
Die Natur des Ameisengiftes ist unbekannt. Es enthält bei den Camponotinen (Formica rufa und pratensis) jedenfalls Ameisensäure. Aber ich bin der Ansicht, daß auch hier, wie bei der Nessel, ein Enzym und nicht nur die Ameisensäure das die Entzündung erzeugende Agens ist. Auch FÜRTH macht nicht die Ameisensäure für die eigentliche Wirkung verantwortlich. Die Giftblasen mit Knopf enthalten ein anderes Sekret (FOREL), das sich z. B. bei Myrmica rubida mit Alkohol trübt. Die Ameisen enthalten außer der Ameisensäure noch einen Riechstoff (1% «ätherisches Öl», NEUMANN, MARGGRAF, JOHN), Fett (MARGGRAF) und Eiweiß, angeblich auch Weinsäure (? HERMBSTÄDT) und Apfelsäure (? PFAFF), sowie «Gallerte», so daß eine (1,25% H.COOH (D. A. V.) enthaltende) Auflösung von Ameisensäure in Spiritus, die meist jetzt als Spir. formicae (Ameisengeist, Esprit de fourmis, Spirito di formica) bezeichnet wird, nicht als gleichwertig mit einem weingeistigen Auszug oder Destillat frisch gesammelter Ameisen betrachtet werden kann.
Die Ameisen werden in der Weise gesammelt, daß man an einem heißen sonnigen Tage im Juni oder Juli eine oben mit Honig bestrichene Medizinflasche bis zur Mündung in einen Ameisenhaufen eingräbt. Die Ameisen kriechen, angelockt vom Honig, in die Flasche, aus der sie nicht wieder herauszukommen vermögen.
Auch die in hohlen Bäumen vorkommende schlankere, bräunlich-schwarze Formica nigra L. kann eventuell zur Ameisenspiritusbereitung herangezogen werden.
Sowohl das durch Destillation der Ameisen mit Spiritus dargestellte Eau de magnanimité, sowie das Ameisenöl (huile de Fourmis) sind jetzt nur noch Volksmittel.
Die Säure der Ameisen war schon Ende des XV. Jahrh. durch Röten der in den Ameisenhaufen gefallenen Cichorienblätter erkannt worden (PFAFF), wurde 1670 von SAM. FISCHER durch Destillation der Ameisen mit Wasser dargestellt und von WRAY schon in ziemlich starker Konzentration erhalten, und darauf zuerst von P. G. SPERLING, dann von NEUMANN studiert, der auch das ätherische Öl (Ol. essentiale aethereum) in den Ameisen auffand. MARGGRAF erkannte 1749 die Eigenart der Ameisensäure und auch SUERSEN stellte die besondere Natur der Ameisensäure des «eintzigen demonstrativen Acidum animale», wie NEUMANN sagt, fest, die FOURCROY und VAUQUELIN für eine Verbindung der Apfelsäure mit Essigsäure erklärt hatten. PFAFF glaubte, daß sie bei der Oxydation mit HNO3 Essigsäure liefert (es entsteht aber hierbei Oxalsäure) und DUMAS, PELIGOT und STAS zeigten, daß sie bei Oxydation von Holzgeist entsteht. Schon BRUNSCHWYG stellte (1500) ein Destillat aus Ameisen her, doch findet sich Spir. Formicarum erst in Arzneitaxen aus der Mitte des XVII. Jahrh. (FLÜCKIGER).
Lit. ESCHERICH, Die Ameise. Braunschweig 1906 (mit vielen morphol. und anat. Abbild. u. Literaturnachweisen). — FÜRTH, Vergl. chem. Physiol. d. nied. Tiere. Jena 1903. — Über die Giftdrüse vgl. MEINERT, Bidrag til de danske Myrers Naturhistor. Kjobenhavn. Kogl. Videnk. Selsk. Skrift 1860 und FOREL, Les fourmis de la Suisse, Denkschr. d. Schw. Naturf. Ges. 1874 und d. Giftapparat u. d. Analdrüs. d. Ameisen. Zeitschr. f. wissensch. Zoolog. 30 (Suppl.) 1878, 28 (mit vorzügl. Abbild.). — Über den Verschluß der Giftdrüse und die Ausspritzung des Giftes vgl. JANET, Etudes sur les fourmis No. 18. Paris 1898. — CH. JANET, Les fourmis Soc. zoolog. de France 1896. — JANET, Essai sur la constitut. morph. d. l. tête de l’insecte. Paris 1899, hier und bei ESCHERICH ein guter Längsdurchschnitt durch eine Ameise. — SPERLING, Dissert. de chymica formicarum analysi. Viteb. 1689. — NEUMANN, Chymia medica 1753 III, 38 (dort die älteste Lit.). — GEOFFROY, Mat. méd. — MARGGRAF, Schriften I, 340. — HERMBSTÄDT, Chem. Vers. mit Ameisen. Phys. chem. Vers. II, 1. — FOURCROY-VAUQUELIN, Gehl. Allg. Journ. Chem. II, 42. — SUERSEN, Ebenda IV, 3. — PFAFF, System d. Mat. med. 1815, 5, 252 (dort weitere Lit.). — DUMAS-PELIGOT, Lieb. Ann. 15, 7. — DUMAS-STAS, Ebenda 35, 137. — BERG-GARCKE, Pharmakogn. 1879, 613. — VOGL, Kommentar. — FLÜCKIGER a. a. O.
II.
Von den weiteren Säuren ist die Essigsäure ebenso weit verbreitet wie Ameisensäure (Vgl. BERGMANN a. a. O.) und begleitet diese oft. Als Ester findet sie sich auch in Sekreten. Propionsäure ist selten. Sie findet sich z. B. in den Blüten von Achillea Millefolium (KRAEMER), in den Früchten von Gingko (BÉCHAMP) und in Amanita Muscarius (BORNTRÄGER). Sie tritt oft bei der Oxydation und der trockenen Destillation organischer Substanzen, als Spaltungsprodukt längerer Kohlenstoffketten auf, und findet sich daher z. B. im Holzessig. n-Buttersäure ist in den Früchten von Sapindus und Tamarindus (GORUP) und in Tanacetum, verestert in Sekreten, z. B. in Pastinaca und Heracleum gefunden worden. (Zusammenstellung in HUSEMANN-HILGER, Pflanzenstoffe.) Die Butter enthält 2% n-buttersaures Glycerin. Isobuttersäure findet sich in den Früchten von Ceratonia (S. 144), der Rhiz. Arnicae (SIEGEL) und verestert im Römisch Kamillenöl (KÖBIG).
III. Baldriansäuredrogen.
Die Normal-Valeriansäure ist selten, die Isovaleriansäure (Isopropylessigsäure, 3-Methylbutansäure):
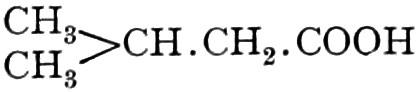
dagegen sowohl in Rhiz. valerianae, wie in Angelica Archangelica (MEYER, ZENNER), der Rinde von Viburnum Opulus und im Delphintran (CHEVREUL) gefunden worden.
Rhizoma Valerianae.
Syn. Rad. valerianae minoris, montanae s. silvestris, Phu minus, Baldrianwurzel, Marien-, Magdalenen-, Mond-, Augen-, Wend-, Speik- oder Katzenwurzel, Speer-, Brach-, Hexen- oder Katzenkraut, Ballerjan, Balderbracken, Polter Johann, Tollerjahn, Dreefoot, Benediktiner-, St. Georgen- oder Gürgen-Kraut, — in der Schweiz: dammarge, tannmark, menten, katzenbuckel, risch tamara (in Graubündten) — valériane sauvage, souche de valériane officinale, herbe aux chats, guérit tous (franz.) — common valerian, vandal root, all-heal (engl.) — valeriana silvestre s. minore (ital.) — valeriaan, faldriaan, koortswortel (= Fieberwurzel) (holl.) — vandelrot, velamsrot, velandrot (schwed.) — vendelród, venderód, vendingsrod (norw.) — velandsurt, danmarks graes (dän.) — semlänoi ladan (russ.) — virma juuri (fin.) — macska gy˝kőnke (ung.) — νάρδος (griech.). — In Indien: kálávála, jalalakan.
Bei PLINIUS und DIOSKURIDES und auch bei IBN BAITHAR und ALHERVI: Fû oder Phu — althd.: baldrian, denmarka — mhd.: valdran, waldrian, tenemarg, abpiss, waldrion — nd.: bolderian, bullerjahn, balderjan, ballerjaon, balderjân, valeraen. In der Alphita, Circa instans, bei SERAPION, in den Tabulae und den Synonomae Bartholomei (I, S. 640) finden sich die Bezeichnungen: Valeriana, Ualariane, Fu, Amantilla (so noch jetzt in Italien), Fistra, Vau, maturella, matrella, matura, matha. Im Mittelalter wurden die Namen Nard, Spiek, Seliank, Saliunk (bes. für Val. celtica benutzt), Theriakskraut, Katzentheriak auch auf Val. off. übertragen und auch die Bezeichnungen marinella, marcinella, marconella, valentina herba benedicta, s. genicularis antilla, agriomela, serpyllum majus, herba gate, dania major, ballariana, maturesia, nancilla benutzt (BRUNSCHWYG). Bei der HILDEGARD: denemarcha — im Ortus sanitatis: boldrian, — bei BRUNSCHWYG: denemarcha, danmarks graes. — bei BOCK, FUCHS: balderian, baldrian, baldrion, denmarck, Augenwurzel, Katzenkraut, Wendwurzel, bei TABERNAEMONTANUS: dania major, großes Dönnmarck.
Etym. GRASSMANN deutet Baldrian etwas abenteuerlich als Balder Johann(es), bringt (wie PERGER und GÜNTHER) die ersten Silben mit dem Gotte Balder, dem Sohn Odins und der Frigga, in Verbindung (baldrs-brâ ist aber Anthemis Cotula) und betrachtet die zweite als «christliches» Anhängsel (?). (Die Balders Feuertod zu Ehren brennenden Sonnwendfeuer wurden später Johannisfeuer). Ob der Ausdruck Wend- oder Wendelwurz auf die Sonnwende deutet (PRUCKMAYR), bleibe dahingestellt. Balder war der «wohlwollende» Gott. Auch die nordische Bezeichnung für Baldrian: velands urt (= Wielandswurz) deutet vielleicht auf die Heilkraft, da Wieland nicht nur der Götterschmied, sondern auch der Götterarzt war. JAC. GRIMM verwirft die Ableitung des Wortes Baldrian von Balder. SCHRADER denkt an Verstümmelung und Umdeutung aus velandsurt. Ich habe (I, S. 1058) der mir jetzt unwahrscheinlich erscheinenden Ansicht von SÖHNS und MARTIN beigepflichtet, daß Valeriana zu Ehren des PLINIUS VALERIANUS (nicht des Kaisers VALERIAN) benannt worden sei, eines römischen Arztes, dessen apokryphe Pflanzenbeschreibung aber wohl ein Werk der Mönche des Mittelalters ist und die sicher richtige Ansicht vertreten, daß umgekehrt Baldrian aus Valeriana umgebildet worden sei (b und v wechseln häufig, das d könnte aus Gründen des Wohllautes eingeschoben sein, KANNGIESSER). Immerhin könnte man auch an Beziehungen von Valeriana zu valere (= gesunden, sich wohl befinden) denken (WEIGAND, WITTSTEIN). So sagt bereits CASPAR BAUHIN: «Officinis et herbariis Valeriana dicitur a multis quibus valet virtutibus». Auf die starke Heilwirkung bezieht sich ja auch die serbische Bezeichnung Odaljan (von odoljeti = überwältigen) — böhmisch: Odolen — und das polnische dolega (doleka = Gewalt) sowie einige französische und englische Namen (s. oben). Da der Name Valeriana, den SCHRADER kaum als echte romanische Bildung anerkennen will, zum ersten Male in einer lateinischen Übersetzung einer arabischen Schrift (der des ISAAC JUDAEUS) vorkommt, halte ich eine Ableitung aus dem Arabischen für möglich. SEYBOLD pflichtet dem bei und schreibt mir (1911), daß er Valeriana als umgebildet aus (Sun)bal berr(ān)ī (sunbal berrī oder berrānī = wilde Narde) glaube ansehen zu sollen. Das erscheint auch mir plausibel. — Daß die alte, schon bei der HILDEGARD auftretende Bezeichnung denemarcha auf Dänemark zu beziehen ist (danmarks graes), wie SCHRADER meint, ist unwahrscheinlich. HARTWICH denkt an tamm-mark, d. h. zahme, kultivierte Mark. Mark ist der Name für das ähnliche Sium latifolium (s. Verwechslungen) und Tamme findet sich oft (Tamme morren = Daucus Carota, Tammschlee = Prunus insititia, weitere bei PRITZEL-JESSEN) bei kultivierten Pflanzen. (In einer Frankfurter Handschrift aus dem XII. Jahrh. steht neben tenemarg: samsucus.) PRUCKMAYR deutet (recht abenteuerlich) — Dennmark als Tinn-mark (= Becher-Mahr, Napf-Mahr oder Saufteufel), da Mittel gegen das Delirium (?). Der Name, in vielen Formen vorhanden (s. oben) und bis auf unsere Tage, z. B. im Berner Oberland, erhalten, gehört zweifellos zu Valeriana, obwohl in der Synonoma (I, S. 639) an einer Stelle ein Petroselinum macedonicum auch «stanmarche» genannt wird. — Die Namen Katzenkraut, Katzenwurz usw. deuten auf die Idiosynkrasie der Katzen für den Baldrian, die durch das Kraut und die Wurzel geradezu in Verzückung geraten, der Ausdruck Ratzenwurzel, daß B. auch ein Mittel gegen Ratten und Mäuse ist (Ortus sanitatis).
Lit. PRUCKMAYR, Deutsch. Pflanzennam. Valeriana. Zeitschr. d. Öster. Apoth. Ver. 1880, 469. — GRASSMANN, Deutsche Pflanzennamen 1870. — Söhns, Unsere Pflanzen 1897. — HARTWICH, Schweiz. Wochenschr. 1896, 494. — PRITZEL-JESSEN, Volksnamen d. Pflanz. — PERGER, Deutsche Pflanzensagen 1864. — KANNGIESSER, Etymol. d. Phanerog. Pflanzennomenklatur. — JAC. GRIMM, Deutsche Mythologie. — FLÜCKIGER, Pharmakogn. — SCHRADER, Reallexikon.
Stammpflanze und systemat. Stellung. Valeriana officinalis L. Flor. suec. 34. Spec. plant. ed. I, 31. — Valerianaceae (Sect. Euvaleriana). Die Gattung Valeriana hat etwa 100 Arten.
Ändert nach der Länge der Ausläufer und den Blättern ab: V. angustifol. TAUSCH (= var. β minor KOCH) in Japan: kesso oder kanokosô, in trockenen Wäldern und auf Hügeln, schmälere, oft ganzrandige Fiedern, stärker behaart, kleinere, gedrängte Blütenstände; Var. α major mit starkem Stengel und tief gezähnten Fiedern; V. exaltata MIKAN, keine Ausläufer; Blättchen breit, ei-lanzettlich, wird bis 2 m hoch; V. excelsa (V. sambucifolia MIK.) in Frankreich, lange Ausläufer, wenig (4–5)jochige Blätter, die unteren Blätter grob gesägt. V. Mykani SYME mit breiten grobgezähnten Fiedern (in England) (Taf. XII); V. latifolia (in Japan), V. Dioskuridis (im Orient), V. capensis, V. dubia, V. javanica usw., die bald als Varietäten, bald als Arten betrachtet und dann als Ser. 3 V. offic. mit 12–14 Arten zusammengefaßt werden (HÖCK). Es sind mindestens 10, zum Teil auch habituell recht gut charakterisierte und daher als Arten beschriebene Varietäten unterschieden worden. Die Variabilität ist sehr groß (IRMISCH). DUFRESNE unterscheidet vier deutsche Varietäten: V. excelsa, V. latifolia (s. media), V. tenuifolia (von der er die Formen V. officinalis und pratensis unterscheidet) und V. lucida. Früher wurde nach den Standorten der Bergbaldrian (silvestris) vom Sumpfbaldrian (palustris) unterschieden. Bei der Ser. V. officinalis zeigen fast alle Arten eine so nahe Beziehung zu der Spezies, nach welcher diese Gruppe benannt ist, daß Höck eine direkte Abstammung von dieser Art annehmen möchte.
HÖCK stellt zur Ser. (3) V. officinalis: V. petrophila (Südwestkleinasien und Armenien), V. ficariaefolia (Persien), V. heterophylla (Sibirien), V. Stracheyi (Himalaya), V. sambucifolia (Skandinavien, England, Pyrenäen, Schlesien, Karpathen, Rußland, Serbien), V. officinalis, V. capensis (Kapland), V. sisymbrifolia (Persien, Kleinasien), V. Dioscoridis (Kleinasien, Griechenland), V. Arnottiana (Khasiaberge), V. Hardwickii (Himalaya), V. javanica (Java), V. Hookeriana (Himalaya), V. Moonii (Ceylon), V. Jaeschkei (Himalaya).
Tafel XII.
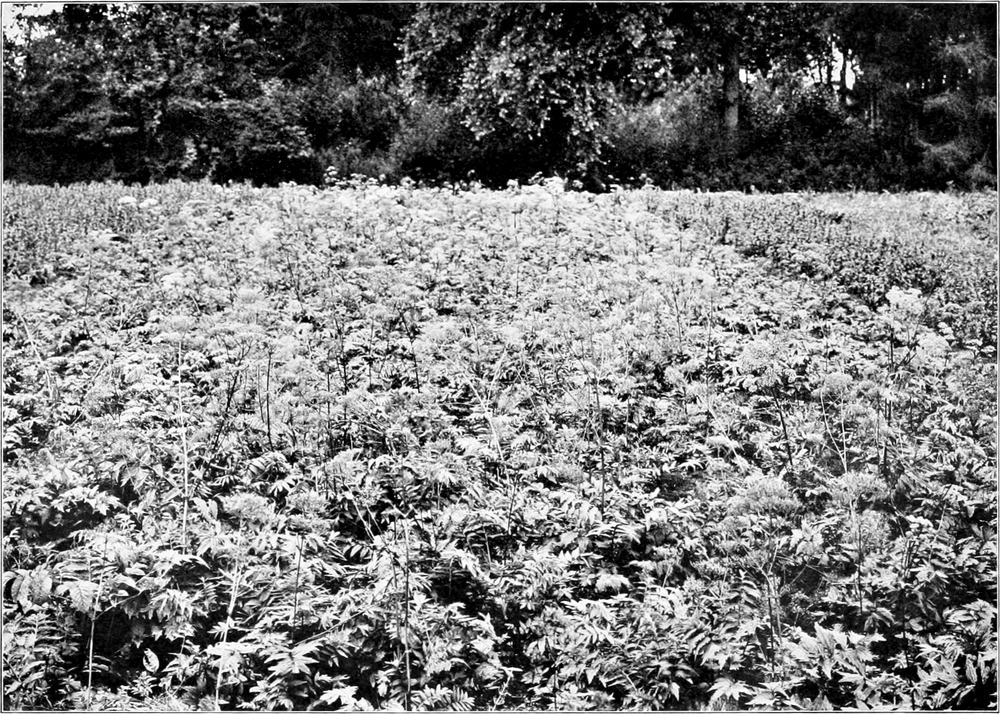
Kultur von Englischem Baldrian in Long Melford Medicinal Herb Farms.
(Stafford Allen and Sons Ltd., Manufacturers of Pharmaceutical products Long Melford, Suffolk phot.)
⇒ GRÖSSERES BILD
Beschreibung der Stammpflanze. V. offic. ist ein ausdauerndes Kraut, das sich durch Ausläufer erneuert. Aus dem 2–3 cm dicken basalen Teile des Stengels, der den Charakter eines rhizomartigen Speichersprosses besitzt (Zentralwurzelstock) entspringen 5–15 cm lange und 2–3 mm dicke, mit 2–3 schuppenförmigen Niederblättern besetzte Wandersprosse (Nebenwurzelstöcke), die an der Spitze speichersproßartig anschwellen und aus deren Knospe ein neuer Stengel sich entwickelt, der aber erst im folgenden Jahre zur Blüte kommt. Der angeschwollene Teil des Nebenwurzelstockes wird später zum Zentralwurzelstock und entsendet dann wieder Wandersprosse. Zuweilen unterbleibt die Bildung von Wandersprossen und die neuen Achsen «entstehen unmittelbar in der Achse der Grundblätter des Mutterstockes». Die Bewurzelung erfolgt an den Speichersprossen. Der bis 1,2 m und darüber hohe Stengel ist aufrecht, stielrund, gefurcht, hohl, kahl, an den Blattansätzen zottig. Die Blätter bilden dekussierte, mit der stengelumfassenden Scheide paarweis miteinander verschmolzene Blattpaare, sie sind unpaarig gefiedert, 5–16jochig, die grundständigen langgestielt, die oberen sitzend, kahl, an den Scheidenrändern zottig, Fiederblättchen gegenständig oder abwechselnd, lanzettlich spitz, mehr oder weniger an der Spindel herablaufend, gesägt oder fast ganzrandig, das oberste Paar mit dem Endblättchen verschmolzen. Es gibt breit- und schmalblätterige Formen (s. oben S. 512). Die endständigen oder in den Achseln der Blätter entspringenden trugdoldigen, meist vielblütigen Infloreszenzen bilden eine dekussierte Rispe, deren oberste Äste zu Dichasien werden, die in Wickel auslaufen. Die hermaphroditen, c. 4–5 mm langen, weißen oder fleischroten, von zwei Vorblättern behüllten Blüten besitzen einen unterständigen, glatten, bis 2 mm langen, oblongen, einfächerigen Fruchtknoten mit einem hängenden anatropen Ovulum, einen aus zehn pappusartigen, linealen, zur Blütezeit eingerollten Blättchen bestehenden Kelch, eine 3–4 mm lange, zygomorphe, ungleich-fünflappige, trichterförmige Corolle, die am Grunde mit einem kurz-spornartigen Nectarium versehen ist, drei der Corolle inserierte Stamina (das obere und linke untere sind abortiert) und einen Griffel mit drei spreizenden Narben. Bei dem sog. männlichen Zustande der Blüte ragen die Stamina weit aus der Blüte hervor, beim sog. weiblichen sind sie zurückgekrümmt und der Griffel überragt die Blumenkrone. Die Gattung Valeriana zeigt deutlichen Übergang von Proterandrie zur Diclinie. Die c. 5 mm lange, einsamige Frucht ist eine Achaene, sie ist von dem großen fiederhaarigen, als Flugapparat dienenden Pappus gekrönt und besitzt einen Rücken-, zwei Seiten- und drei Bauchnerven. Der Same ist endospermfrei.
Der Baldrian ist vom arktischen Rußland an durch fast ganz Europa verbreitet, nur im Süden ist er spärlicher und fehlt in Portugal, Süd-Spanien, Südost-Frankreich. Er findet sich ferner in der Krim, Kleinasien (die Form V. Dioskoridis SIBTH. von Vorderasien bis zur Balkanhalbinsel), in Kaukasien und Türkisch-Armenien, Nord-Kaschmir, Süd-Sibirien, Mandschurei, Japan (hier besonders die var. angustifol.) In Indien findet sich die Form V. dubia BUNGE, in Java die Form V. javanica BL. (in den Gebirgen des Monsungebietes etwa sechs Formen oder Arten). Eingeführt ist er in Südafrika (V. Capensis THBG. ist = V. offic. var.) und Nordamerika, z. B. in New-York, New-Jersey (var. silvatica?).
Die Pflanze findet sich auf feuchten Wiesen, an Gräben, Bächen, Flußufern, Waldrändern, sowohl in den Niederungen wie den Bergregionen. Die Bergformen pflegen aromatischer zu sein als die Sumpfformen.
Blüht in Deutschland im Juni und Juli (bis August).
Lit. FERNANDO Höck, Beitr. z. Morphol., Gruppier. u. geograph. Verbreit. d. Valerianaceen. Englers Bot. Jahrb. 3 (1882) 1 (hier die Lit.). — EICHLER, Blütendiagramme. — Entwicklungsgesch. d. Blüte in WINNICKI, Diss. Bern 1908. — LUERSSEN, Med. pharm. Bot. (dort die system. Lit. der Familie). — HENKEL, U. S. Dep. Agric. 1906. — TIMBAL-LAGRAVE, Jahresb. Pharm. 1867, 50. — IRMISCH, Beitr. z. Naturgesch. d. einheim. Valeriana-Arten, insbes. V. offic. u. dioica. Abh. Naturf. Ges. Halle 1853 mit 4 Taf. (Morphol. auch d. Rhizome). — CHATIN (s. unter Anat.). — TCHIHATCHEFF, Asie mineure 1856. — REGEL, Tent. flor. ussuriens. Mem. Ac. St. Petersb. 1862. — HERDER, Bull. Soc. imp. Nat. Moscou 1864, I, 229. — BEEBY, Journ. Bot. 1888. — Abbild.: HAYNE, Arzneigew. III, 32. — NEES VON ESENBECK, t. 254. — BERG-SCHMIDT, Atlas, II. Aufl. t. 10. — PABST-KÖHLER, Medizinalpfl. I, t. 47. — BENTLEY-TRIMEN, Medic. pl. t. 146. — SYME, Bot. t. 666 und in zahlreichen Floren usw. Schon in DODONAEUS, Purgant., eine gute Abbild. d. Ausläufer. Die Abbild. bei GUIBOURT ist V. sambucifolia (TIMBAL-LAGRAVE).
Pathologie. Über die pflanzlichen Schädlinge teilt Prof. E. FISCHER folgendes mit: Auf den oberirdischen Teilen von Valeriana officinalis sind verschiedene parasitische Pilze beobachtet, unter denen wir besonders Erysiphe Cichoracearum (DC.) und Uromyces Valerianae (SCHUM.) WINT. erwähnen; doch dürften dieselben, wenn sie sich nicht sehr intensiv entwickeln, die Entwicklung der Rhizome kaum beeinträchtigen.
ISRAËL berichtet über die tierischen Schädlinge:
Falter: Melitaea dictynna ESP. Raupe an Plantagoarten, Melampyrum pratense, Valeriana officinalis, Valerianella olitoria usw. Gortyna flavago HB. Raupe in den Stengeln vieler markhaltiger Pflanzen, z. B. Senecio, Valeriana, Petasites, Lappa, Verbascum, Sambucus. Caradrina quadrimaculata F. Raupe an Stellaria, Alsine, Valeriana, Fumaria usw. Eupithecia valerianata HB. Räupchen an Blüten und Früchten von Baldriangewächsen. Sonst leben die meist sehr kleinen Raupen der Eupithecien meist in den Dolden der Umbelliferen, Blüten und Früchte verzehrend. Schistodepressaria pulcherimella STT. Das Räupchen dieser Gelechidee rollt die Blätter von Umbelliferen und Baldrian zusammen.
Gradflügler: Thrips (spec?). Auf Baldrianblüten und anderen Gewächsen (Helleborus, Eupatorium) trifft man oft ein und dieselbe kleine Physapode.
Kultur und Erntebereitung. Baldrian wird in Deutschland in Sachsen (Bockau, Lauter, Zschorlau), Franken (Schweinfurt), Harz (Pansfelde, Aschersleben, Ermsleben, Ballenstedt), Thüringen (Cölleda, Heldrungen, Ringleben, Neuhausen, Gebesee) [— weitere Orte I, S. 64 —], in Holland, Frankreich (Houdan), Belgien (Hennegau, I, S. 69), Ungarn (I, S. 68), Schweden (seit 1761) und in England (z. B. bei Chesterfield in Derbyshire) gebaut. HANBURY nennt 1872 die Orte: Ashover, Wolley Moor, Morton, Stretton, Higham, Shirland, Pilsley, North und South Wingfield, Brackenfield, gegenwärtig sind die Kulturen beschränkter und finden sich namentlich bei letzterem Orte am River Amber (N. SMITH) und in den Long Melfort Medicinal Herb Farms in Suffolk (Taf. XII). Baldrian wird auch in den Vereinigten Staaten (New York, New Hampshire, Vermont) und in Japan kultiviert. Versuchskulturen befanden sich 1904 in Washington. Die Fortpflanzung wird durch die Schößlinge (nicht durch Samen) besorgt.
Von der wildwachsenden Pflanze wird die Baldrianwurzel besonders in Gebirgsgegenden [Thüringen, Harz, Ardennen, Vogesen (Dep. Vosges und Ardennes), Schweiz, Österreich] gesammelt, da die Pflanze auf trockenem, steinigem Boden ölreicher ist. Doch ist im deutschen Großdrogenhandel zurzeit vorwiegend kultivierter Baldrian.
1910 unterschied der deutsche Handel: Harzer, Thüringische, Belgische und Holländische Rhiz. valerian. Die mit vielen Nebenwurzeln besetzte, mehr gelbliche Rad. Valerianae montanae Hercynica, besonders die kleinzöpfige, echte Gebirgsware von der wilden Pflanze, wird meist der Rad. valer. min. Thuringica cultivata, und selbst der nachgekämmten und der großzöpfigen kultivierten Harzer V. vorgezogen (CAESAR-LORETZ 1910). Am geringsten bewertet wird die R. val. minor. citrina aus Belgien und Frankreich.
Der eigenartige Geruch tritt erst beim Trocknen stärker hervor, frische Wurzel riecht wenig und anders als die Droge (s. unten S. 520). Es unterliegt keinem Zweifel, daß gerade beim Baldrian während des Trocknens auch bei gewöhnlicher Temperatur, besonders aber bei etwas höherer, in den absterbenden Zellen, solange noch Wasser vorhanden ist, tiefgreifende Veränderungen durch die Enzyme hervorgerufen werden. CHOAY hat daher vorgeschlagen, bei 0° im Vakuum zu trocknen. Das ist nicht nötig, wenn das Enzym (wie BOURQUELOT vorschlägt) durch Erhitzen der frischen Pflanze abgetötet wird (s. hinten). Die getrocknete Droge verändert sich weiter nicht, wenn sie trocken aufbewahrt wird.
Die Kultur erfolgt in England in der Weise, daß man die Tochterknollen wilder Valeriana — man benutzt besonders Valer. Mikani SYME (s. oben S. 512) — als Stecklinge benutzt. Die Blütenanlagen der sich entwickelnden Pflanzen werden abgeschnitten. Man läßt nur die tieferliegenden Blätter stehen. Im September bis Oktober wird die ganze Pflanze ausgegraben, Stengel und Blätter beseitigt, die dickeren Rhizome längs durchschnitten, und alle in mit Löchern versehenen Kästen in fließendem Wasser gewaschen. Das Trocknen erfolgt auf Brettern in der Wärme im November und Dezember. Trockenheit schädigt die Kulturen. Es entwickeln sich dann nur wenige Blätter. In Cölleda werden die vom Zentralknollen losgetrennten Ausläufer gepflanzt (bisweilen in Mischkultur mit Rüben). Nach einem Jahr wird das Rhizom samt den Wurzeln gegraben, gewaschen und meist mit eisernen Kämmen von den feinen Nebenwurzeln befreit («gekämmte» Wurzel) und entweder auf kurzgeschnittenen Wiesen oder, auf Fäden aufgereiht, an der Hauswand getrocknet (A. MEYER 1891). Die Drogenhäuser kämmen dann noch nach (CAESAR-LORETZ). Die Wurzeln werden bisweilen zu Zöpfen geflochten (wie bei Angelica). In Pansfelde a. Harz werden die Ausläufer der wilden Pflanze zum Anbau benutzt.
In Deutschland wird im Herbst (September, Oktober) nach der Blütezeit gegraben, da die Droge dann ölreicher ist als im Frühjahr (ZELLER). SALADIN VON ASCOLI bezeichnet (im Compendium aromatariorum 1488) den August als den günstigsten Monat und auch die alten Kräuterbücher nennen als Sammelzeit «zwischen zwei Unser Lieben Frauen Tagen», d. h. 15. August bis 15. September. Die wendische Volkssitte schreibt den Tag vor Johannis vor (BECKENSTEDT). — Im Frühjahr zu sammeln (wie PFAFF und noch Ph. austr. VIII vorschlägt) empfiehlt sich nicht, da dann Verwechslungen mit am gleichen Standort vorkommenden Pflanzen leicht möglich sind. Es darf die Droge sowohl von der kultivierten wie der wildwachsenden Pflanze gesammelt werden (D. A. V und Ph. helv. IV treffen keine besonderen Bestimmungen). 9–10 Teile frische geben 2–3 Teile trockene Droge. Die Wurzel wird durch das Trocknen dunkler. Das Nachtrocknen erfolgt am besten in der Kalk-Kiste.
Die Jahresproduktion von Harzer Baldrian beträgt 200–400 cwts. (In erster Linie kommt Pansfelde hier in Betracht, CAESAR-LORETZ). Eine gute Thüringer Mittelernte beträgt 800 bis 900 cwts (GEHE). Die Vollernte 1000–2000 cwts (CAESAR-LORETZ). Nach Hamburg kamen belgischer Baldrian 1905: 24500, 1908: 35500 kg, und holländischer B. 1908: 6100 kg (TUNMANN). Frankreich verwendet besonders deutschen B. (L. PLANCHON). In Japan wird Valeriana var. angustifol. MIQ. (nach HOLMES dagegen: V. latifolia) kultiviert. Hamburg empfing 1908: 3700 kg japan. B. (TUNMANN).
Baldrian ist in Blechbüchsen aufzubewahren und schon beim Trocknen auf dem Trockenboden gegen Katzen zu schützen (s. oben S. 512). Der Ortus Sanitatis (I, S. 688) sagt bereits: «Die katzen ryben sich an diß krut und werffen darvider ihren samen, und darumb sol diß krut vervaret werden vor den katzen, da es zu artzney gebrucht sal werden.» Baldrian hat auch für Ratten und — Forellen Anziehungskraft.
Lit. UPSHER SMITH, Cultivat. of valerian rhizome in Derbyshire. Year book ph. 1904, 557. — SCHWABE, Medizinkräuterbau in Thüringen. Pharm. Zeit. 1876 (Handelsbl.) — GEHE, Handelsber. 1885 u. flgd. — TUNMANN, Drogenhandel Hamburgs. Apoth. Zeit. 1910. — FLÜCKIGER-HANBURY, Pharmacographia. — HOVORKA-KRONFELD, Volksmedizin. — BOURQUELOT und HÉRISSEY haben (Journ. pharm. 1911) einen Apparat konstruiert, frische Pflanzen mit siedendem Alkohol zu sterilisieren.
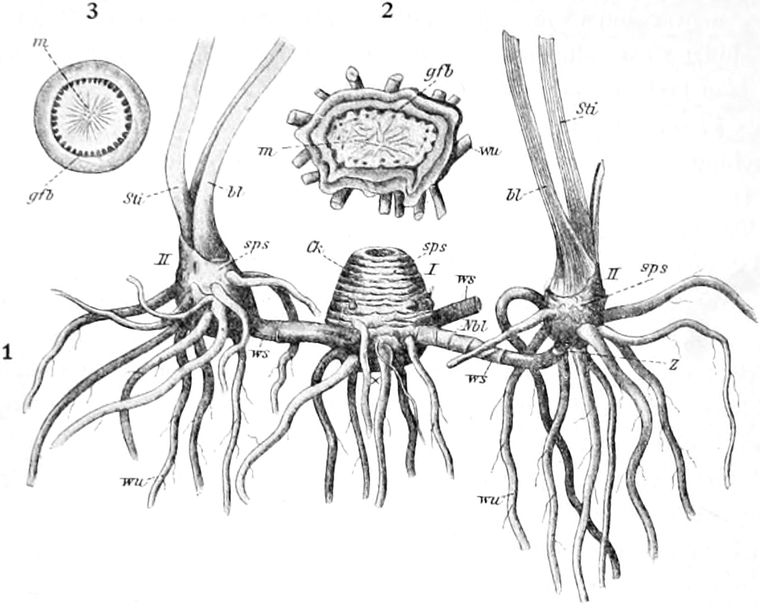
Fig. 167.
Valeriana officinalis
L.
1. Centralknollen (I) mit den Nebenknollen (II) durch Ausläufer (ws) verbunden. 2. Querschnitt durch den Centralknollen. 3. Querschnitt durch einen Nebenknollen.
[
Tschirch-Oesterle
, Atlas.]
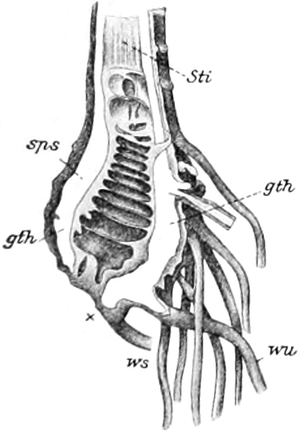
Fig. 168.
Valeriana officinalis.
Längsschnitt durch einen Nebenknollen, unten der Rest des Ausläufers (Wandersprosses).
[
Tschirch-Oesterle
, Atlas.]
Morphologie der Droge. Die unterirdischen Organe des Baldrian werden bald als Rhizoma (Ph. helv. IV), bald als Radix (D. A. B. V) bezeichnet. Die richtigste Bezeichnung wäre «Rhizoma cum radicibus», denn die Droge besteht aus dem mit Wurzeln (und Ausläufern) besetzten Rhizome oder «Knollstock» (BERG), der oben noch meist durch Stengel- und Blattreste beschopft ist. «Das Rhizom zerfällt in eine dünne ausläuferartige Wandersproßregion und in eine diese oben abschließende knollige Speichersproßregion. Die erstere vermittelt die Verbreitung des Rhizoms im Boden. Im typischen Falle figuriert ein Speichersproß, dessen zugehörige basale Wandersproßregion abgestorben ist als Zentralknollen oder Zentralwurzelstock (Fig. 167). Wie die Keimungsgeschichte lehrt, geht der Zentralknollen aus dem Hypocotyl hervor (TSCHIRCH und DYE). Derselbe entsendet nach verschiedenen Seiten Ausläufer und diese Wandersprosse verdicken sich alsdann an ihrer Spitze knollenartig, auf diese Weise Nebenknollen oder Nebenwurzelstöcke bildend, die alsdann ihrerseits wieder Ausläufer entsenden» (TSCHIRCH). Die Speichersprosse sind reich bewurzelt. Die Wandersprosse tragen bisweilen an den Knoten einige Wurzeln. Die Droge enthält also sowohl dicke Zentral- wie dünnere Nebenwurzelstöcke. Beide stehen vertikal im Boden und sind im Innern gekammert (Fig. 168). Die Kammern entsprechen den Internodien. Die Zentralknollen sind oft mehrere Zentimeter dick, außen durch die Blattreste geringelt, oben mit dem Knospenrest, unten mit der Wandersproßnarbe versehen, die Nebenknollen sind dünner und tragen an der Spitze mehr oder weniger lange Blatt- und Stengelreste, unten gehen sie in die Wandersproßregion über, die wie ein echter Ausläufer, überall gleich dick und an den Knoten mit Niederblättern und Wurzeln besetzt ist. Die mit zahlreichen feinen Nebenwurzeln besetzten Wurzeln werden bis 30 cm lang und sind meist etwa 2–3 mm dick, frisch — wie die Wurzelstöcke — hell, nach dem Trocknen graubraun, außen etwas geschrumpft und sehr brüchig, die einen (Ernährungswurzeln, TSCHIRCH) nach dem Aufweichen weich und biegsam, die anderen (Befestigungswurzeln, TSCHIRCH) starr und fest. Der Baldrian zeigt also Heterorhizie (hier 1905 von mir zuerst nachgewiesen). Die kräftiger riechenden kleineren Wurzelstöcke der Gebirgsdroge wurden früher als Rad. valerian. montana s. anglica unterschieden. Die kultivierte Droge pflegt reicher bewurzelt zu sein als die wilde.
Baldrian schmeckt eigenartig süßlich-gewürzhaft und bitterlich.
Anatomie. Das Lupenbild des Rhizomquerschnittes ist unregelmäßig im Umriß (Fig. 167, 2 u. 3), das Cambium erscheint als dunkle, unregelmäßige Linie, vom unregelmäßigen Gefäßbündelring treten Bündel in die Wurzeln. Die meisten Wurzeln (s. unten) besitzen einen sehr schmalen runden Zentralzylinder, der im Querschnitt kleiner ist als die oft 3–4mal dickere Rinde (Fig. 169, 1).
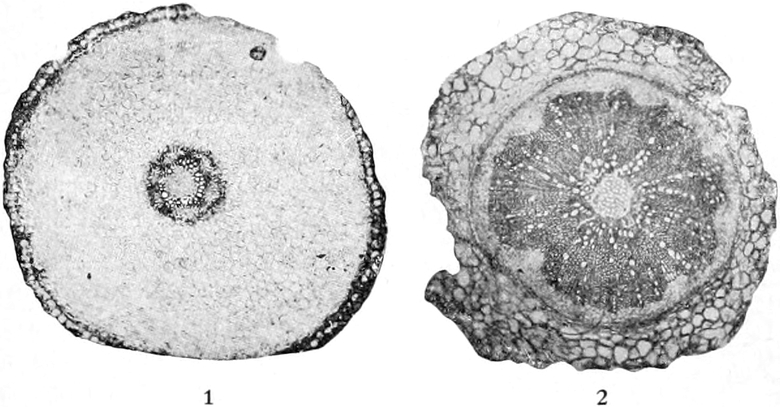
Fig. 169.
Valeriana officinalis.
1. Querschnitt durch eine Ernährungswurzel. 2. Querschnitt durch eine Befestigungswurzel von etwa gleichem Durchmesser, c. 2,5 mm.
[
Neuber
phot.]
Die Speichersproßregion (Zentral- und Nebenknollen) trägt außen Kork, dann folgt eine Stärke (Körner bis 8 mik., HARTWICH) führende dünnwandige Rinde, deren Zellen bisweilen Tüpfelung zeigen, und endlich die verkorkte Endodermis, die von unverkorkten Zellen unterbrochen und bei älteren Knollen bisweilen durch Sklereïden verstärkt ist. Innerhalb derselben liegt der Gefäßbündelzylinder, der bei den Nebenknollen aus einem, bei den Hauptknollen oft aus zwei Kreisen von kollateralen Bündeln besteht, die bei letzteren im Gefäßteil oft Libriform, sonst nur unregelmäßig radial angeordnete Spiral- und Tüpfelgefäße und Holzparenchym führen. Zwischen dem Siebteil und der Endodermis liegt oft ein breiter Collenchymbeleg. Von dem Gefäßbündelzylinder treten viele Bündel in die Ausläufer und Wurzeln. Seine Elemente werden dadurch und durch eine Stauchung des ganzen Organs verbogen, im Längsverlauf unregelmäßig. Das ebenfalls Stärke führende parenchymatische Mark ist in ziemlich regelmäßigen Abständen geschwunden, so daß Kammern entstehen (Fig. 168). In den stehenbleibenden Diaphragmen (Marklamellen) finden sich reichlich sehr stark verdickte Sklereïden. Die Diaphragmen entsprechen den Knoten, die Kammern den Internodien.
Die ausläuferartige, im Querschnitt kreisrunde, nur wenige Millimeter dicke Wandersproßregion zeigt einen ähnlichen Bau, nur ist das Mark viel schmäler und nicht geschwunden, die Internodien sind länger, aber an den Knoten liegen auch hier Sklereïden führende Querbrücken. Der Gefäßbündelkreis ist durch interfaszikulares Libriform geschlossen. Der Gefäßteil führt Spiral- und Tüpfelgefäße. Die Hypodermis führt das Öl.
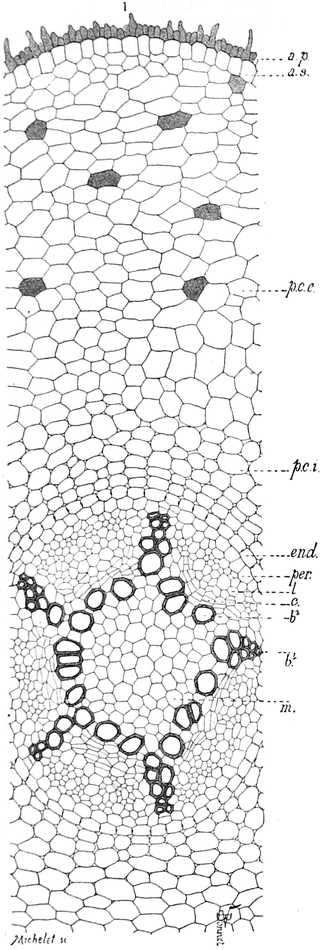
Fig. 170.
Valeriana officinalis.
Querschnitt durch eine pentarche Ernährungswurzel, bei der eben der primäre Bau in den sekundären übergeht.
[Nach
Bonnet
.]
Die Wurzeln zeigen stets noch die primäre Rinde, die hier nicht (wie sonst gewöhnlich) abgeworfen wird, lassen also da und dort noch auf der Epidermis Wurzelhaare erkennen. Der Zentralzylinder ist von der stärkefreien Endodermis umgeben. Aus der primären Bündelanlage, die meist triarch ist, aber di- bis octarch sein kann, entwickeln sich zwei ganz verschiedene Wurzeltypen: Ernährungswurzeln (Fig. 169, 1) mit großem, Stärke führendem Mark, kleinen wenig gliederigen, in einen Kreis gestellten, keine mechanischen Elemente führenden Gefäßteilen und Befestigungswurzeln (Fig. 169, 2) mit großem, strahlig gebautem, reichlich Libriform führendem Holzzylinder und kleinem Mark (TSCHIRCH und NEUBER). Bei den Ernährungswurzeln unterbleibt die Bildung sekundären Gefäßteiles entweder ganz oder es entstehen nur wenige Elemente zwischen den primären Anlagen. Alsdann ist der Übergang des primären Baues des Bündels in den sekundären meist noch schön zu sehen (Fig. 170). Die primäre Rinde folgt dem Dickenwachstum des Zentralzylinders. Ihre Zellen sind relativ dickwandig und erfüllt mit einfachen, rundlichen oder zu 2–6 zusammengesetzten bis 30 mik. großen Stärkekörnern. Bei Alkoholmaterial sieht man da und dort Sphaerokristalle. Das unter der verkorkenden Epidermis liegende, ebenfalls verkorkte, einreihige Hypoderm, das die Wurzel also mantelartig umgibt, enthält [neben bisweilen beobachteten prismatischen Kristallen von Kampher (?), VOGL] das ätherische Öl, das durch Schwefelsäure zuerst kirschrot, dann violett und blau wird (ZACHARIAS). Löst man Epidermis und Hypoderm von der Wurzel ab, so ist der Rest geschmacklos (A. MEYER). Das Öl kommt also nur im Hypoderm vor, nicht in Interzellularlücken der Rinde (SCHLEIDEN). ZACHARIAS sah bei den Ölzellen außer der Suberinlamelle eine verholzte und eine Zellulosehaut. Bisweilen ist eine resinogene Schicht, die aus einer Schleimmembran hervorgeht, zu sehen (TSCHIRCH).
Bei längere Zeit in Glycerin liegenden Schnitten beobachtet man überall in Rinde und Mark kleine spießige Kristalle. Erwärmt man den in Wasser liegenden Schnitt und läßt erkalten, so entstehen größere büschelförmige Kristalle.
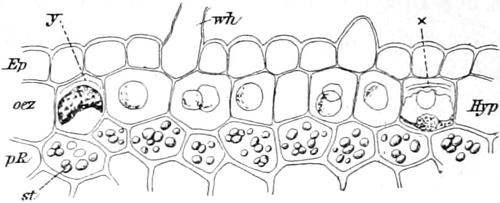
Fig. 171.
Valeriana officinalis.
Randpartie einer Wurzel, stärker vergrößert. oez die Öl führende Hypodermis.
[
Tschirch-Oesterle
, Atlas.]
Das Pulver enthält sowohl die Elemente der Wurzeln wie die der Rhizome, führt daher sowohl Sclereïden wie dünn- und dickwandiges, stärkeführendes Parenchym und dessen Fragmente, Stärkekörner von 3–15 (8–12 KOCH), selten 18 oder 20–30 mik Durchmesser, schmale Ring-, Spiral- und weitere Tüpfelgefäßfragmente (Breite der Gefäße 8–60, die Tüpfelgefäße meist 30–40 mik KOCH) und Libriform mit linksschiefen Spaltentüpfeln. Die Fetzen der Wurzelhaar tragenden Epidermis und der gestreckten Hypodermzellen treten besonders bei Behandlung mit konz. Schwefelsäure hervor. (Verkorkt sind: Endodermis, Hypodermis, Epidermis, Kork). Die mit Stärke gefüllten Parenchymzellen lassen nach Behandlung mit Chloral ein zartes Plasmanetz erkennen. Oxalatkristalle fehlen, dagegen findet man oft Sandkörner und bisweilen Elemente der Stengel und Blattstiele.
Lit. TSCHIRCH-OESTERLE, Anatom. Atlas (dort das Detail). — TSCHIRCH, Heterorhizie bei d. Dikotylen. Flora 1905. Die Einwände von FLASKÄMPER (Flora 1910) gegen die Heterorhizie sind unberechtigt. Die Befestigungswurzeln sind nicht Alterszustände der Ernährungswurzeln. — A. MEYER, Wissensch. Drogenkunde I, 215 (m. Abbild.) u. DAMMERS Lexik. d. Verfälsch. 1887. — VOGL, Kommentar 1908. — BERG, Anatom. Atlas t. 16. — HÉRAIL-BONNET, Manupilat. pl. II. — GODFRIN-NOËL, Atlas man. de l’hist. d. drog. 1887, t. 19 u. 26. — Mikrophotographien in BRAEMER-SUIS, Atlas de photomicrographie 17 u. 18. — KARSTEN-OLTMANNS, Pharmak. Fig. 84–87. — HARTWICH in Hagers Pharm. Praxis. — IRMISCH a. a. O. — HOECK, Beitr. z. Morph. d. Valerianac. Englers Bot. Jahrb. 1882 und a. a. O. — CHATIN, Etudes bot. chim. et méd. sur les Valérianées. Paris 1872 (m. 14 Taf.) (hier auch die Rhizome der übrigen Valerianaarten). — HOLFERT (prim. Bau) Arch. Ph. 1889. — NEUBER, Vgl. Anat. d. Wurz. usw. Dissert. Bern 1904. — ZACHARIAS, Sekretbeh. m. verkorkt. Membr. Bot. Zeit. 1879, 617. — MAISCH (Mexic. Val.) Am. journ. ph. 1886, 168. — Die Keimung und Entwicklungsgeschichte der unterirdischen Organe ist beschrieben in C. A. DYE, Entwicklungsgesch. Unters. d. unterird. Org. von Valeriana usw. Dissert. Bern 1901 (mit zahlr. Abbild.). — Das Pulver: KOCH, Atlas II, t. 24. — MOELLER, Atlas t. 107. — GREENISH-COLLIN, Veget. Powders pl. 119.
Chemie. Baldrianwurzel enthält (nach LINDENBERG 1886) in Prozenten: 11,57 Wasser, 0,36 Fett, 0,9 äther. Öl, 0,31 flüchtige Säure löslich in Äther, 0,85 Harz und Wachs, 0,975 Harz löslich in Alkohol, 1,64 Gerbstoff, 0,565 Citronen- und Weinsäure, 5,32 Zucker, 14,39 andere Substanzen löslich in Wasser, 7,83 Eiweißsubstanzen, 16,7 Metarabin, Phlobaphene usw., 12,87 Stärke, 11,65 Zellulose, 16,8 Lignin u. and., 4,31 Asche.
Die von PENTZ (1829) und GROTE (1831) im Baldrian aufgefundene, von TROMMSDORFF als besondere Säure erkannte, studierte und benannte Baldriansäure (Valeriansäure, s. oben S. 510), die PENTZ fälschlich für Essigsäure hielt, findet sich in der Droge zu 0,25–1,4% (in frischer Wurzel 0,6%, SCHOONBRODT), teils frei, teils als Kaliumsalz und Borneolester (im Öl, s. unten), begleitet von Apfelsäure (TROMMSDORFF, SCHOONBRODT) und Magnesium, Calcium- und Kaliummalat, sowie von Buttersäure, Ameisensäure (als Calciumformiat), Essigsäure (ASCHOFF) und Methyläthylessigsäure (SHIMOYAMA und HYRANO).
Vollständig kann man die Baldriansäure aus der Wurzel, besonders solcher, die ziemlich frisch ist, nur dann erhalten, wenn man zunächst die Ester (s. unten) mit einer Säure oder Alkali verseift und dann erst mit einer Säure (am besten Phosphorsäure) destilliert. KATZ gründet die Wertbestimmung der Tinctur. valer. auf die Titration der durch Destillation mit Phosphorsäure (nach vorherigem Eindampfen mit Soda) übergetriebenen Baldriansäure. Die aus der Wurzel gewonnene Säure ist das Hydrat C5H10O2.H2O. Sie besteht fast ganz aus optisch inaktiver Isovaleriansäure: (CH3)2CH.CH2.COOH, der kleine Mengen rechtsdrehender Methyl-Äthyl-Essigsäure:
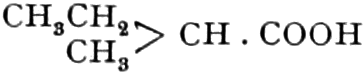
Ameisensäure, Essigsäure und Capronsäure beigemengt sind. Auch in der synthetisch aus Amylalkohol (DUMAS, STAS, CAHOURS) mittelst Chromsäuregemisch (BALARD 1845) dargestellten Säure ist neben Isovaleriansäure etwas Methyl-Äthyl-Essigsäure vorhanden. Die Identität des Ac. valerianic. e radice mit der synthetischen Baldriansäure und der 1817 im Fette der Delphine (besonders Delphinus globiceps) von CHEVREUL entdeckten Acide delphinique ou phocénique stellte DUMAS fest, die Identität der bei der Spaltung des Athamantins entstehenden Säure mit Baldriansäure WINCKLER (1842). Daß es mehrere Baldriansäuren gibt, fand DESSAIGNES (1851).
SCHOONBRODT fand gelegentlich seiner umfangreichen vergleichenden Untersuchung frischer und trockener Arzneipflanzen, daß frische, stets viel Zucker enthaltende, Baldrianwurzel nur wenig riecht, obwohl sie mehr ätherisches Öl enthält als getrocknete, dieses Öl aber keinen starken Geruch besitzt, getrocknete dagegen, die weniger süß schmeckende Extrakte liefert, weniger Öl gibt, dieses aber stark nach freier Baldriansäure riecht, von welcher sich in ganz frischer Wurzel nichts findet. CARLES zeigte, daß es ein Enzym ist, welche beim Absterben gelegentlich des Trocknens die Zersetzung der Ester der Baldriansäure bewirkt (Baldrian enthält auch Mangan in der Asche). Schon beim Absterben des Rhizoms, mehr noch beim Trocknen, werden also die Säuren in Freiheit gesetzt.
BÜHRER (Clarens) erhielt bei, auf meine Veranlassung (1909) angestellten, Titrationen von Auszügen mit verd. Alkohol mit n/10 NaOH einen Verbrauch an ccm (auf 1 g frische Wurzel berechnet):
Wurzel aus Chaux de fonds, frisch 1,4. Bei 70° getrocknet 1,9.
Wurzel vom Rhonetal bei Aigle, frisch 1,6. An der Luft getrocknet 2,4. Bei 70° getrocknet 2,8. Dialysat 3,0.
Wurzel aus dem Elsaß (Mühlhausen), frisch 3,7. An der Luft getrocknet 4,7.
Pflanzen verschiedener Standorte zeigen also ziemliche Verschiedenheiten.
Neben Gummi, Schleim und Stärke findet sich auch Zucker und zwar sowohl Dextrose als Saccharose (HARLEY, KROMER, in Thüringer Baldrian 0,73 bis 1,42‰, in russischem 0,3‰) — bisweilen setzt sich Saccharose aus äther. Baldriantinktur ab —, sowie eine Oxydase (CARLES) und ein hydrolytisches Enzym (TSCHIRCH). Ferner (in frischer Wurzel) zwei, wie es scheint, mit Kaffeegerbsäure verwandte, durch Blei fällbare Baldriangerbsäuren (C14H9O8 und C12H8O9, CZYRNIANSKY). Schon RUNGE fand eine «grünige Säure», deren Salze an der Luft grün werden. Das bekannte Nachdunkeln der Baldriantinkturen kann nicht auf das Enzym zurückzuführen sein, da es besonders bei der ätherischen Tinktur hervortritt. Es ist wohl auf diese Gerbsäuren oder das Öl zurückzuführen. Die Alkaloide Chatinin und Valerin (WALICZEWSKY) bedürfen näherer Untersuchung. Chatinin wird von den gewöhnlichen Alkaloidreagentien gefällt. Es soll zu 0,015% in der frischen Wurzel enthalten sein. Neuerdings beobachtete auch CHEVALIER in frischem Baldrian ein sehr zersetzliches Alkaloid. Auch ein Glykosid (HARLEY) und ein Harz werden angegeben. Alkaloid, Glykosid und Harz (?) werden beim Trocknen zerstört (CHEVALIER). TROMMSDORFF erwähnt einen eigentümlichen Extraktivstoff «Baldrianstoff» (Valerianin) und einen gelben Farbstoff.
Die europäische Rhiz. valerian. enthält 0,1–1% der Trockensubstanz (am meisten in holländ. Wurzel, SCHIMMEL) ätherisches Öl. Der Gehalt ist abhängig vom Boden (KIONKA). Schon FR. HOFFMANN, BOERHAAVE, GEOFFROY wußten, daß frische Wurzel weniger Öl gibt als getrocknete. Das gelbgrüne bis bräunlichgelbe, ziemlich dünnflüssige, schwach saure Öl wird mit der Zeit dunkelbraun und dickflüssig und scheidet Borneol ab. Es besitzt ein spez. Gewicht von 0,93–0,96 (Ardennen- und Vogesenöl 0,875–0,900) und dreht links (−8 bis −13°). Säurezahl: 20–50, Esterzahl: 80–100, Verseifungszahl: 100–150. Es enthält (besonders nach BRUYLANTS und OLIVIERO) mehr oder weniger freie Baldriansäure und auch ziemlich viel (9,5% GEROCK) Baldriansäure-l-Bornylester, dann die l-Bornylester der Ameisen-, Essig- und Buttersäure (je 1%), ferner l-Camphen, l-Pinen, Citren (?), Terpineol, ein Sesquiterpen (Siedep. 160–165°) einen Alkohol C15H26O (Sp. 190°) und einen stark links drehenden Alkohol C10H20O2 (F. 132°). Borneen, Valeren, Valerol (GERHARDT, PIERLOT) sind zu streichen. Auch ein Blauöl (Azulen), das bei c. 300° übergeht, ist nachgewiesen (FLÜCKIGER). (KOPP gibt diesem Blauöl FLÜCKIGERS die Formel C23H34O2?). Bei spektralanalytischer Untersuchung eines Blauöls, das bei 210–265° überging, fand ich vier Bänder: I. λ = 0,720 bis 0,750 μ, II. λ = 0,650–0,670 μ, III. λ = 0,590–0,610 μ, IV. λ = 0,555 bis 0,575 μ, matt. Ein Tropfen Baldrianöl färbt sich mit 20 Tropfen Schwefelkohlenstoff und 1 Tropfen Salpetersäure tief violett (FLÜCKIGER). Das aus frischen wildwachsenden Pflanzen dargestellte Öl hat ein geringeres spez. Gewicht (0,875–0,900, OLIVIERO) als aus der Droge bereitetes.
Das zu 8% (nach SHIMOYAMA 2,7%) erhältliche, also viel reichlicher gebildete, schwerere (spez. Gew. 0,990–0,996) Öl der japanischen Var. angustifolia (Kessoöl) ist ähnlich zusammengesetzt, es enthält ferner ein Sesquiterpen (Sp. 260–280°) und das linksdrehende (αD = −70°6′) Kessylacetat (Sp. 178–179°). Das Blauöl (C14H23O2COCH3) siedet auch bei c. 300° (BERTRAM, GILDEMEISTER, WALBAUM). Die spektralanalytische Untersuchung des Öls ergab für die vier Azulenbänder (s. oben) eine ähnliche Lage wie beim deutschen Baldrianöl (TSCHIRCH). Die V. mexicana lieferte bei der Destillation fast gar kein äther. Öl, sondern fast nur Baldriansäure (89% des Hydrates, SCHIMMEL & CO.). KEMP erhielt aus Indischer Narde (s. unten S. 525) 0,9% eines linksdrehenden Öles vom spez. Gew. 0,974, beim Erhitzen nimmt das Öl eine grünliche Fluoreszenz an (PREBBLE, vgl. auch LAFITE, Pharm. Zeit. 1887, 465 und ASAHINA, Journ. pharm. soc. Japan 1907 und SCHIMMELS Ber. 1907). In der Valeriana celtica findet sich 1,5 bis 1,75% (bzw. 0,1% HAENSEL) Öl, in dem ein Sesquiterpen und Palmitinsäure (?) nachgewiesen wurde (SCHIMMEL 1887, HAENSEL 1909).
Der Extraktgehalt schwankt von 17,64–24,03% (RÖDER), 17,35–31,95% (DIETERICH), 26% (CARLES). Zweijährige Rhizome geben die höchste Extraktausbeute, Pharm. austr. verlangt wenigstens 15%. Da die Wurzeln noch die Wurzelhaare besitzen (s. oben S. 518), die bekanntlich mit den Bodenteilchen verwachsen (richtiger: verkleben), so ist Baldrianwurzel durch Waschen niemals ganz von Erde zu befreien — auch die «staubfreie» des Handels enthält Erde —. Der Aschengehalt schwankt daher sehr. Besonders schlecht gewaschener Baldrian enthält oft viel Asche (bis 30,8% PETERS, bis 41% HAUKE, bis 43,98% RÖDER 1906). 4,7–8,4% sind bei gutem Baldrian beobachte Zahlen (HAUKE). GADD und SYDNEY wollen nicht über 9% hinausgehen. HAUKE gibt als obere Grenzzahl für ganze Wurzel 10%, für Pulver 12% an. Pharm. helv. 12%. Die Asche ist grau. Phosphate, Sulfate und Silikate fand darin schon TROMMSDORFF.
Lit. TROMMSDORFF, N. Journ. Pharm. 18 (1809), 3, 24 (1832), 134, 26 (1834), 1., Über die Valeriansäure u. ihre Verbind. Ann. d. Pharm. (6) 1833, 176, 10 (1834), 213. — PENTZ, Arch. Ph. 28, 337. — GROTE, Arch. Pharm. 32, 160, 33 (1830), 160, 38 (1831), 4. — RIEGEL, Journ. pr. Chem. 11 (1845), 316. — (Darstellung der Säure: WINKLER, Buchn. Rep. 1833, BONAPARTE, J. chim. méd. 1842 u. 1843, RABOURDIN, Journ. pharm. 1844, 310, WITTSTEIN, Buchn. Rep. 87 [1845]). — ASCHOFF, Arch. Pharm. 48 (1846), 275]. — CZYRNIÁNSKY, Über d. nicht flücht. Säur. d. W. v. V. offic. Lieb. Ann. 71 (1849), 21. — SCHOONBRODT, Journ. d. méd. Bruxelles 45 und 46, Deutsch in WITTSTEIN, Vierteljahrsschr. 18, 73 (Jahrb. Ph. 1869, 17). — CARLES, Valeriane et Oxydase. Journ. pharm. 12 (1900), 148. Rep. pharm. 1903, 289. — LINDENBERG, Unters. d. Rhiz. von V. offic. u. V. Hardwickii. Pharm. Zeitschr. f. Rußl. 1886. — KATZ, Wertbest. homöop. Urtinkt. Pharm. Centralh. 1901, 291. — HAUKE (Asche), Wien 1902. — PETERS, Apoth. Zeit. 1909, 538. — WALISZEWSKI, Un. pharm. 1891, 109 (Apoth. Zeit. 1891, 186). — SHIMOYAMA und HYRANO (Mitt. Med. Fak. Tokio 1890. Apoth. Zeit. 1892, 440 (Kesso). — K. DIETERICH (Extraktgehalt), Helfenb. Ann. 1900, 211. — HARLEY, Saccharose dans l. org. vég. etc. Thèse Paris 1905. — KROMER, Pharm. Centralh. 49 (1908), 397. — CHEVALIER, Compt. rend. 144 (1907), 154. — KIONKA, Biochem. Centralbl. 1905, 452. — ZAVATTI und SESTINI. Zeitschr. anal. Chem. 8 (1869), 388. — HOLZMANN, Arch. Ph. 1898, 409.
Öl: GRABERG, in CRELL, Die neuesten Entdeck. 6 (1782), 123. — TROMMSDORFF, Trommsd. Journ. d. Pharm. 18 (1809), 3 und Neues J. d. Ph. 24 (1832), 134. Lieb. Ann. 6 (1833), 176 u. 10 (1834), 213. — PFAFF, Syst. d. Mat. med. 1815 (dort d. ält. Lit.). — ETTLING, Lieb. Ann. 9, 40. — ROCHLEDER, Ebenda 44 (1842), 1. — GERHARDT, Ebenda 45 (1843), 29, Journ. pr. Ch. 28 (1843), 34. — GERHARDT und CAHOURS, Annal. d. chim. 3 (1841), 60. — KOPP, Arch. Ph. 55 (1876), 204. — ZELLER, Ausb. äth. Öl aus offiz. Pfl. Stuttg. 1855. — PIERLOT, Compt. rend. 48, 1018. — BRUYLANTS, Bull. Ac. r. méd. Brux. II, 1209. Journ. pharm. 1878, 349. Ber. d. chem. Ges. 11 (1878), 452. — OLIVIERO, Compt. rend. 117 (1893), 1096. Bull. soc. chim. 11 (1894), 150 u. 13 (1895), 917. Et. chim. sur l’huile essent. de Valer. Thèse Paris 1895. — GEROCK u. BRONNERT, Journ. pharm. Els. Lothr. 19 (1892), 82. — FLÜCKIGER, Arch. d. Pharm. 209 (1876), 204. — SCHIMMEL, Ber. 1887, 1891, 1894 und 1897 und GILDEMEISTER-HOFFMANN, D. äther. Öle. — TSCHIRCH, Harze u. Harzbehälter.
Kesso: BERTRAM u. GILDEMEISTER, Arch. Ph. 228 (1890), 483. — BERTRAM u. WALBAUM, Journ. pr. Ch. 49 (1894), 18.
Verfälschungen und Verwechslungen. In erster Linie werden genannt: Valeriana sambucifol. (TIMBAL-LAGRAVE), besonders in Böhmen, Veratrum album (BENTLEY 1877, KASPAR 1886) — die Unterschiede beschreibt BENTLEY (übersetzt bei WITTSTEIN) —, Sium latifolium L. var. longifolium L. (BERNBECK 1880), Cypripedium macranthum und Cynanchum Vincetoxicum (CHARBONNIER bis 36%) mit gelblich-weißem Rhizom. Dann finde ich (z. B. bei WITTSTEIN) angegeben: (von mir nicht beobachtet) Valeriana dioica L. (Rad. valerian. palustr., Rad. Phu minor.) mit dünnem Rhizom, Valeriana Phu L. (Rad. valerian. major., hortens., pontici oder Phu) mit großem Rhizom und dicken hellen Wurzeln (vgl. Paralleldrogen), Ranunculus acris, polyanthemos und repens L. (HOPPE 1807), Sium angustifol., Serpentaria virgin., Geum urbanum L. (Rad. caryophyllat.), Scabiosa arvensis L. (REVEIL bis 22%), Succisa pratensis MÖNCH., Betonica officinalis L., Eupatorium cannabinum L., Arnica montana L., Spigelia und Helleborus-Arten. Alle nehmen, wenn dem Baldrian beigemengt, den Geruch an. Man muß zur Unterscheidung das Mikroskop zuhilfe nehmen. Besonders gefährlich, aber leicht kenntlich, sind die Beimengungen der giftigen Rhizome von Veratrum und Sium, von denen aber nur das Letztere an gleichem Standorte vorkommt. Ein gekammertes Rhizom besitzt Cicuta virosa, scheint aber nie im Baldrian beobachtet zu sein.
Der rote Baldrian der Gärten ist Centranthus ruber, der griechische Baldrian Polemonium coeruleum.
Lit. TIMBAL-LAGRAVE, Journ. chim. méd. (5), 3, 589 (Jahresber. Pharm. 1867, 50). — BENTLEY, Pharm. Journ. 7 (1877), 649. — BERNBECK, Arch. Ph. 1880, 431. — L. PLANCHON, Precis 1906. — WITTSTEIN, Handwörterb. d. Pharm. 1882.
Anwendung. Rhiz. valerian. wird als Tonico-Excitans (bei Ermüdung, FÉRÉ 1904), Antispasmodicum, Nervinum, Antihystericum und Antiepilepticum benutzt [die Anwendung als Antiepilepticum wird auf FABIUS COLUMNA († 1460) zurückgeführt]. Es ist ein wichtiges krampfstillendes Mittel (z. B. bei Krampfkolik) und spielt unter den Volksheilmitteln (hier auch als Diureticum, Fieber- und Wurmmittel), sowie unter den Mitteln des Pfarrer KNEIPP eine große Rolle. (Über die Verwendung in Rußland vgl. DEMITSCH, Russische Volksheilmittel in KOBERT, Studien I.) «Plus la préparation contient d’acide valérianique, moins elle est active» (POUCHET 1904). Da der Isovaleriansäure-Borneolester, C10H17O.OC5H9 (s. oben S. 521), als der wirksame Bestandteil des Baldrian betrachtet wird, bringt man ihn — synthetisch dargestellt — seit 1904 unter dem Namen Bornyval als Mittel gegen Neurasthenie, Hysterie und Herzleiden, meist in Gelatineperlen à 0,25 g, in den Handel. An der Wirkung des Baldrian sind aber jedenfalls auch andere Körper noch beteiligt. CARLES schlug daher (1903) vor, ein von ihm «Pan-Valériane» genanntes Fluidextrakt durch Extraktion der Droge mit 18% Weingeist, dem 5% Ammoniak zugesetzt worden war, zu bereiten. KALLE schlug Zusatz von Ammonsalzen bei Bereitung der Baldriandestillation vor (Pharmac. Un. Stat. hat die alte Tinct. valer. ammon.). Ich sehe keinen Vorteil im Ammoniakzusatz. Das Dialysatum Valerianae GOLAZ (Saxon) wird aus der frischen Pflanze bereitet. In Frankreich wird der frische Saft empfohlen oder Darstellung der Präparate aus der frischen Pflanze unter Erhaltung der Oxydase. Die Bereitung der als sehr wirksam erkannten Präparate aus der frischen Pflanze sollte aber besser in der Weise erfolgen, daß man die frisch gegrabenen und gewaschenen Wurzeln zehn Minuten in Wasser von 80° bringt, um das Enzym zu töten und dann erst extrahiert (TSCHIRCH). Dabei bliebe denn auch wohl das Alkaloid, dem eine Wirkung auf den Augapfel und die Medulla oblongata zugeschrieben wird, sowie das Glykosid erhalten. BOURQUELOT schlägt Sterilisation durch Eintragen in siedenden 90% Alkohol vor. Jedenfalls ist aus der «sterilisierten» Wurzel oder mittelst siedenden Alkohols bereitete Baldriantinktur haltbarer, da das Enzym seine Wirkung nicht mehr ausüben kann (LESUEUR).
Lit. LOUIS PLANCHON, Prec. d. mat. med. 1906, II, 187 (dort weitere Angaben). — LESUEUR, Infl. d. mod. de prép. etc. Thèse Paris 1910. — BOURQUELOT, Journ. pharm. 1911.
Geschichte. Im Altertum hieß eine der medizinisch verwendeten Narden Phu (wohl ein poetischer Name). PLINIUS sagt (XII, 26) bei Narden: «In nostro orbe proxime laudatur Syriacum, mox Gallicum, tertio loco Creticum, quod aliqui agrium vocant, alii phu, folio olusatri etc.» Die Beschreibung, die DIOSKURIDES (I, 11) vom φοῖ gibt, den er auch νάρδος αγρία nennt, und den er als im Pontus vorkommend angibt, stimmt auf Valeriana officinalis (SPRENGEL, V. o. kommt im Orient vor), resp. auf die wohl nur als eine der kleinasiatischen Formen der Officinalis oder jedenfalls als eine naheverwandte Art zu betrachtende, von HAWKINS aufgestellte, V. Dioscoridis, Sibth. fl. Graec. (SIBTHORP, FRAAS). Er erwähnt, daß sie mit der geruchlosen Wurzel der Oxymyrsine (Ruscus aculeatus) verfälscht werde und beschreibt die Unterschiede. Bei SCRIBONIUS LARGUS (I, S. 578) findet sich Phu und Phu pontici semen, das auch als Valeriana Dioskuridis zu betrachten ist. Bei den Hippokratikern spielte der B. (wie noch heute) eine große Rolle in der Frauenpraxis und er war auch ein Bestandteil des berühmten Antidots von SOTIRA (I, S. 593) und der Pastillen des ANDROMACHUS (ebenda). Der Name Valeriana tritt zum ersten Male in der lateinischen Übersetzung des aus dem X. Jahrh. stammenden arabischen Werkes über die Nahrungsmittel des ISAAC JUDAEUS (I, S. 598 op. omn. 1515, cap. 45) auf: «Fu id est valeriana, melior rubea et tenuis et quae venit de armenia et est diversa in sua complexione». Er findet sich dann auch im XI. Jahrh. bei CONSTANTINUS AFRICANUS (De omnibus medico cognitu necessariis Bas. 1539, 348): Fu id est valeriana. Naturam habet sicut Spica Nardi» und im gleichen Jahrhundert auch (nach HANBURY) in den angelsächsischen tierärztlichen Büchern (I, S. 684). Ob das Fu des ISAAC JUDAEUS (s. oben S. 511) Val. offic. war, ist zweifelhaft, aber wahrscheinlich, wohl aber dürfen wir in dem Fu i. e. valeriana des CONSTANTINUS AFRICANUS unsere Pflanze erblicken, da er sie ausdrücklich der Spica Nardi und der Celtica gegenüberstellt und auch das Fu des SIMON JANUENSIS (I, S. 664) ist Baldrian. Die mittelalterlichen Namen und die der Patres s. oben S. 511. Ricettario Fiorentino (I, S. 793) unterscheidet valeriana domestica (maggiore) und v. silvatica (minore). Nur die erstere soll benutzt werden. CORDUS bezeichnet Phu auch als Gartenseliunk und Spikwurzel. Valeriana findet sich im Gothaer Arzneibuch aus dem XIV. Jahrh. (I, S. 679) und in der Frankfurter Liste (1450), im Nördlinger Register (1480) steht Fu neben spica nardi und spica celtica, in SALADINS Compendium (I, S. 665) Phu. Das Braunschweiger Register (1521) hat nur noch valeriane (auch ein Baldrianwasser — wie BRUNSCHWYG (1500) ein Denmarckwasser), aber Rad. Phu majoris (= V. Phu) steht noch 1724 bei BERLU (I, S. 951). Bei BRUNFELS steht: «Fu id est Valeriana vel Potentilla vel Amantilla. Sec. Diosc. multi appellant Narduun agrestem. Circa instans dicit Fu intelligitur radix et sic est. Et multi vulgares vocant eam herbam Benedictam.» FUCHS (I, S. 843) gibt eine vorzügliche Abbildung unseres Baldrian, den er Phu germanicum nennt. BOCK (I, S. 841) bildet ab: Valeriana vera (Nardus agrestis), V. vulgaris und V. exigua. Bei JEAN BAUHIN steht: Valeriana major odorata radice; bei POMET, der eine Abbildung gibt: La grande valeriane. POMET setzt sie im Gegensatz zur Petite Valeriane, deren Wurzeln einige Phu pontique nennen. GEOFFROYS Traité 1757 (I, S. 947) kennt drei Arten Valériane: La valériane des jardins ou la grande Val. (V. hortensis, Phu folio Olusatri Dioscoridis BAUHIN Pinax), La valériane sauvage ou des bois ou petite Val. (V. sylvestris major BAUHIN Pinax) und La Val. des marais ou petite V. aquatique (V. palustris minor BAUHIN Pinax). — Die wilde Valeriana ist unsere V. officin., die Garten-V. wohl V. Phu, der kleine Wasserbaldrian V. dioica. LINNÉ übernahm Valeriana als Gattungsname und unterschied: V. officinalis, V. Phu und V. celtica (= Nardus celtica Dioscoridis BAUHIN Pinax). Die Kultur des B. ist erst spät versucht worden. Er fehlt noch bei KARL, im St. Galler Klosterplan, bei MACER und STRABO, sowie im Kalender des HARIB (I, S. 612). In den Destillierbüchern des XVI. Jahrh. sind Vorschriften für Baldrianwurzeldestillate mit Wasser und Wein enthalten. Das Öl erhielten FR. HOFFMANN, BOERHAVE, CL. J. GEOFFROY sowohl aus trockener wie aus frischer Wurzel (PFAFF). Dann beschrieb es GRABERG und TROMMSDORFF, der die Wurzel untersuchte, nannte (1830) die Säure Valeriansäure. Alte Dissertationen über Valeriana sind: J. C. SPIES, De Valeriana, Helmst. 1724 und M. ALBERTI, De Valerianis officinalibus, Hal. 1732 (I, S. 928 u. flgd.).
In der germanischen Götterlehre wird die Pflanze erwähnt. Die Göttin HERTHA trug einen Baldrianstengel als Reitgerte (PERGER). Im nordischen Altertum hieß sie Wielandswurz (s. oben S. 511). Im Volksglauben ist Baldrian ein kräftiges Schatzkraut gegen Hexen und Teufelszauber und gegen Elfenneid (SCHILLER, Tier- und Kräuterb. d. Mecklenb. Volk.). («Hättst du nicht Dosten und Baldrian, wöllt ich den Kragen dir umdrehet han», ruft der Hexenmeister). Der Bräutigam muß am Hochzeitstage einige Blätter der Pflanze bei sich tragen. Das Rhizom gilt aber als Antaphrodisiacum, mit Bibernell zusammen dann auch als Pestmittel «Baldrian und Bibernell, hält die Pestilenz zur Stell». (Das finnische rutto juuri bedeutet Pestwurz.) Nach SCHAMBACH wird beim Graben der Wurzel in Mecklenburg gesungen: «Balderjan! Most upestan, Most hengan, Most helpen allen Minschenkindern. Un allen Naversrindern!» (RELING und BOHNHORST). In Sachsen ist der Vers bekannt: «Trinkt Baldrian, sonst müßt ihr alle dran» (weiteres bei SÖHNS). In Serbien lautet ein Spruch: «Dies kostbare Kraut zu vernachlässigen warnt die vila» (GRIMM). Baldrian ist auch Bestandteil einiger Pestlatwergen.
Im Mittelalter und dem Beginn der Neuzeit scheint der Baldriangeruch beliebt gewesen zu sein, da der Baldrian zum Parfümieren von Zimmern, Kleidern und Wäsche benutzt wurde (TURNER, New Herball 1568, LANGHANS, Garden of Health 1633), ähnlich wie im Altertum V. celtica L. und Nardostachys Jatamansi DC. (s. unten). In England wurde B. in früheren Zeiten setwall (sonst auch für Zedoaria benutzt) genannt und viel gebraucht. GERARDE bemerkt in seinem Herball (1567), daß die ärmeren Klassen in Nord-England keine Speise ohne B. bereiteten (HANBURY). Also auch der Geschmack muß beliebt gewesen sein.
Paralleldrogen. Von dem Indian and Colon. addend. to Brit. Pharm. (I, S. 22) wird als Ersatz der V. officin. auch das Rhizom von Valeriana Wallichii DC. (V. villosa WALL., V. Jatamansi JONES, V. Spica VAHL), in Indien: dálá, wálá, bálá, tagar (weitere Namen in Pharmac. indic.) — zugelassen, die von Kashmir bis Bhután bis zu Höhen von 10000 Fuß und in den Khásiabergen vorkommt (Dict. econ. prod. India). Die stark nach Baldriansäure riechende Wurzel liefert c. 1% äther. Öl und enthält 3,13% Gerbstoff, 6% Zucker, 14% Stärke und 1% Harz (LINDENBERG, Pharm. Zeitschr. f. Rußl. 1886).
Ähnlich wie diese wird das Rhizom von Valeriana Hardwickii WALL. (V. tenera WALL., V. javanica BL., V. acuminata ROYLE) in Indien: tágger, die Wurzel: ásárun, die an den gleichen Standorten wie V. Wallichii vorkommt und auch sehr hoch (bis 12000 Fuß) steigt, aber wohl nur eine Form der V. offic. ist, benutzt. Es soll dies die syrische Narde der Alten (s. unten) gewesen sein (ADAMS).
BIDIE (Pharm. ind.) empfiehlt als Baldrianersatz ferner die in den Nilagiris wachsende, bei der Destillation viel Baldriansäure gebende Valeriana Brunoniana, (Pharm. indic.).
O’SHAUGHNESSY bezeichnet (Bengal Disp.) als einen brauchbaren indischen Ersatz des Baldrian auch Nardostachys Jatamansi DC. (Patrinia Jatam. DON., kaum von N. grandiflora DC. zu trennen) — in Indien: Jatamánsi (sansc.) báluchar, bhutakesi (= Teufelshaar), arab.: sumbulul-aa sáffir (bei IBN BAITHAR: sambal). Es ist dies die echte indische Narde (Nardus indica, Spica Nardi, sunbul hindi, sennbol (arab.), nerd (hebr.), die in den nordindischen Gebirgen (Himalaya), besonders in Nepal, Kumaon und Bhutan bis 17000 Fuß hoch steigt. Aber deren von faserigen Niederblattresten umhülltes Rhizom riecht nicht nur nach Baldriansäure, sondern auch nach Moschus und Patchouli. Wegen dieses eigenartigen Geruches wurde diese Narde im Altertum viel zur Bereitung wohlriechender Salben (νάρδος πιστική = echte oder flüssige Narde TRISTRAM) zur Salbung des Körpers (vgl. I, S. 1014) benutzt, wie wir aus der Bibel und HORAZ erfahren. Sie dient noch heute (mit Galgant, Prunus Mahaleb, Andropogon muricatus, Pogostemon Patchouli u. and.) zur Bereitung des von den indischen Frauen benutzten Haarwaschwassers Angalepan (Pharmac. indica) — war aber auch bereits bei den Hippokratikern Heilmittel. Sie wurde schon von PLINIUS von der unechten Narde (Ozaenites vom Ganges) und dem Pseudonardus (Nardus italica = Lavendel) unterschieden. Später diente zu gleichem Zwecke die in den südlichen und östlichen Alpen wachsende, bei den Alpenbewohnern als Speik bekannte römische oder keltische Narde oder Saliunca, Nardus ex Apulia (Valeriana celtica. L.), die auch ein Bestandteil des Mithridats (bei AVICENNA) war, der die keltische gut von der indischen unterschied. Zum gleichen Zweck diente auch die Moschuswurzel von Ferula Sumbul. Aber auch Andropogonarten (Schoenos, indisches Gras) wurden bisweilen als indische Narde bezeichnet, galten aber schon im Altertum nicht als echte Narden.
Die indische Narde wird schon in Susrutas erwähnt. Der Autor von MAKHZAN EL-ADWIYA vergleicht sie mit dem Schwanze des Zobels. Es ist zweifelhaft, ob νάρδος aus dem iranischen (npers.: nârd) oder dem semitischen (hebr.: nêrd) Kulturkreise stammt. Alle Ausdrücke gehen auf das indische nálada (schon in Atharvaveda als Aromapflanze genannt). PERIPLUS nennt νάρδος als Exportartikel indischer Häfen. ALEXANDER traf die Pflanze in Gedrosien (ARRIAN, Anabasis VI, 22). Durch die Bibel verbreiteten sich got. nardus, ahd. narda (SCHRADER). DIOSKURIDES kennt außer νάρδος (νάρδου στάχυς GALEN, Spica nardi PLINIUS, Nardos ARRIAN, Nardifolium COLUMELLA), von der er eine aus Gebirgen stammende «syrische» (aber nicht in Syrien gesammelte), eine von dem Tale des Ganges exportierte (Gangitis) und eine sampharitische (wohl über Arabien kommende) unterscheidet (er weiß, daß die Gebirgsnarde die beste ist) noch: νάρδος κελτική (von Ligurien und Istrien) und ν. ὀρεινή (aus Cilicien und Syrien). Die syrische (d. h. hier indische) Narde ist jedenfalls Nardostachys Jatamansi, die vom Ganges vielleicht ein Andropogon (nach anderen Nardostachys grandifol.), die keltische: Valeriana celtica, die Bergnarde wohl V. tuberosa. Was die sampharitische ist, ist unklar. Des PLINIUS Gallische Narde (s. oben S. 525) ist vielleicht Valeriana saxatilis (SPRENGEL). SCRIBONIUS LARGUS nennt die keltische Narde Saliunca, COLUMELLA Nardum celticum. Im Liber de simpl. ad Paterniam stehen die Namen: Salvicula, Saliunca und Saloincha. SCRIBONIUS LARGUS bemerkt, daß Nardus indica, celtica und italica, Spica nardi (Lavendula?) und indisches Gras ähnlich riechen, was ich aber nicht finden kann. Auch CELSUS (I, S. 587) kennt indische, syrische und gallische Narde. Narde steht sowohl im Periplus (I, S. 535) wie in der Alexandrinischen Zolltafel. In der mittelalterlichen Literatur wird die echte Narde nur noch einmal unter den Räuchermitteln beim Einzug HEINRICH VI. in Rom erwähnt (FLÜCKIGER-HANBURY). In den Destillierbüchern (z. B. BRUNSCHWYG) ist sie nicht mehr genannt, wohl aber Spikenard und Spica (HOFFMANN). Die echte Narde kommt hier und da noch nach London und die keltische Narde wird noch jetzt in den schweizerischen und italienischen Alpen gesammelt und von Triest nach dem Orient exportiert (FLÜCKIGER).
Als Paralleldroge kann kaum gelten das wenig aromatische Rhiz. valerianae majoris von Valeriana Phu L., einem als Gartenpflanze da und dort (Schlesien, Livland) kultivierten, in Armenien, Kaukasien, dem Ural und Südsibirien einheimischen Gewächs, wohl aber alle oben (S. 512) angeführten, zur Sectio Officinalis gehörenden Arten (bez. Varietäten), besonders die V. angustifolia (V. offic. var. angustifolia MIQ.) Japans (kesso, kisso, kanoko-so), mit kurzem, reich bewurzeltem Rhizom — seit 1879 im Handel. In Frankreich wird durch die Herboristen oft Val. excelsa POIR. gesammelt (CAMUS 1901). Ferner sei erwähnt die Valeriana mexicana DC. (s. oben), neben welcher in Mexico auch V. ceratophila HBK. und V. toluccana DC. medizinisch benutzt und bisweilen nach Europa gebracht werden (HOLMES). Weitere, ähnlich wirkende Valerianaarten in DRAGENDORFF, Heilpflanzen und in PLANCHON-COLLIN, Drogues simples 1896.
Lit. GILDEMEISTER-HOFFMANN, Äther. Öle, II. Aufl., S. 208. — Abbild. der indischen Narde: ROYLE, Illustrations of the Himalayan Bot. t. 54 (kopiert bei NEES). — JONES, On the spikenard of the ancients Transact. Asiat. Soc. Bengal. Calcutta 1889. — ROXBURGH, ebenda. — FLÜCKIGER-HANBURY, Pharmacogr. — FLÜCKIGER, Pharmakogn. — DYMOCK, Mat. med. West. Ind. — TRISTRAM, Nat. history of the bible. — Pharmacogr. indica. — Dict. econom. prod. of India. — GUIBOURT, Hist. nat. d. drog. (dort Näheres über die Narden, auch Abbild.). — SCHRADER, Reallex. d. indogerm. Altert.
IV.
Die Produkte der Oxydation der Hexosen sind Glukonsäuren (Hexonsäuren), z. B. Glukuronsäure (S. 77), Glukonsäure, Zuckersäure (S. 77), Schleimsäure (S. 282), bei stärkerer Oxydation tritt aber Zerfall ein und es entsteht Glykolsäure, Oxalsäure, Traubensäure, Weinsäure. Schon SCHEELE beobachtete (1776), daß bei der Oxydation von Zucker Oxalsäure auftritt. Bei der Aufspaltung des Zuckers bei der alkoholischen Gärung (?) und der intramolekularen Atmung entsteht aber auch dl-Milchsäure (α-Oxypropionsäure), CH3.CH(OH).COOH, die sich zuweilen im Wein findet und bei der intramolekularen Atmung der Zuckerrübe sich bildet und die in größerer Menge bei der Milchsäuregärung des Trauben-, Milch- und Rohrzuckers auftritt.
Die Glykolsäure (Oxyessigsäure), CH2OH—COOH, findet sich im Zuckerrohr und kommt auch im Rübensaft und unreifen Trauben vor. Sie liefert oxydiert zunächst die in unreifen Früchten (Wein, Stachelbeeren und Äpfeln) vorkommende Glyoxylsäure: COH—COOH, dann Oxalsäure: COOH—COOH.
Die Oxalsäure ist bei den Pflanzen und auch den Drogen weit verbreitet (C. SCHMIDT, BAYLEY, PAYEN, vgl. die Zusammenstellung in CZAPEK, Biochemie), besonders als Calciumoxalat, das zuerst SCHEELE (1785) im Rhabarber auffand, das die Mikroskopiker aber schon früher gesehen hatten (I, S. 341), und von dem besonders die Flechten reichliche Mengen, bis zu 66% des Trockengewichtes (Lecanora esculenta), enthalten. Oxalsäure tritt auch als saures Kaliumsalz auf (in Oxalis-, Rheum- und Rumexarten).
An die Oxalsäure schließen sich dann an:
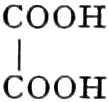
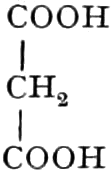
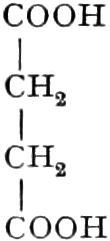
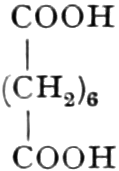
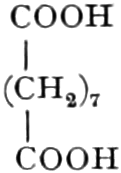
Oxalsäure Malonsäure Bernsteinsäure Korksäure Azelainsäure
von denen besonders die Bernsteinsäure in unreifen Früchten (Wein, Stachelbeeren, Johannisbeeren, Äpfeln, Bananen), aber auch in Atropablättern, Rhabarberstielen und in der Zuckerrübe, sowie als Harzester (TSCHIRCH und AWENG) im Bernstein vorkommt und endlich die sich an die Bernsteinsäure anschließende Gruppe der Oxysäuren:
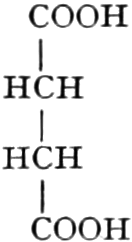
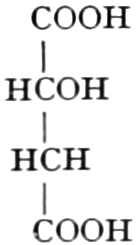
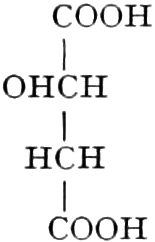
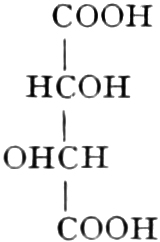
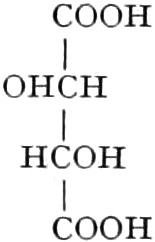
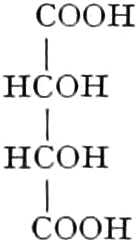
Bernsteinsäure d-Apfelsäure l-Apfelsäure d-Weinsäure l-Weinsäure Meso- weinsäure

Racemische Apfelsäure Racemische Weinsäure
Die von SCHEELE (I, S. 968) entdeckte Apfelsäure (DONOVANS Acide Sorbique) ist als l-Apfelsäure weit verbreitet (BRACONNOT, Übersicht bei CZAPEK). Sie findet sich meist gebunden, aber auch frei, besonders reichlich in den Vogelbeeren (VOGEL, HOUTON LABILLARDIÈRE, LIEBIG), den sauren Äpfeln, — und dem daraus dargestellten Extractum ferri pomati —, dann auch in Kirschen, Pflaumen, Weintrauben, Heidelbeeren, Ananas, den Beeren von Hippophaë, und Berberis, den Blättern des Tabak (VAUQUELIN), des Chelidonium majus und Rheum (3,5% saures Malat), dem Euphorbium (25% Calciummalat, TSCHIRCH und PAUL) und in vielen Pilzen (z. B. Polyporus officinalis). Besonders reichlich ist Apfelsäure aber in den Blättern der Crassulaceen (25–30% des Trockengewichtes) enthalten; die hier vorkommende Säure soll aber eine vierte stereoisomere, rechtsdrehende Form sein, die mit keiner der übrigen übereinstimmt (ADERSON).
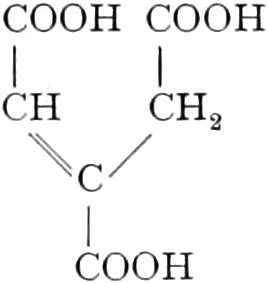
Von den ungesättigten niederen Fettsäuren interessieren uns nur:
und
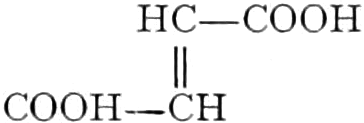
Fumarsäure
Aconitsäure
von denen die erstere in Pilzen häufig ist, und auch z. B. in Cetraria islandica (S. 268), aber auch in Phanerogamen (Fumariaceen, Papaveraceen) vorkommt, die andere in Rüben und Ranunculaceen (Aconitum, Adonis, Delphinium) vorkommt. «Vielleicht begleitet sie ständig die verwandte Citronensäure» (EULER).
V. Weinsäuredrogen.
Ganz außerordentlich verbreitet ist die Weinsäure, zwar nicht die l-Weinsäure, auch nicht die Mesoweinsäure und die Traubensäure (racemische oder d + l Weinsäure), wohl aber die d-Weinsäure ([α]20D = +15,06°, F. 170°), die zuerst SCHEELE (1769) aus Weinstein isolierte. Sie findet sich — vornehmlich gebunden — in den Weinbeeren (S. 40), den Maulbeeren, Tamarinden, Ananas, Gurken und vielen anderen Früchten, Wurzeln, Blättern und Zwiebeln (revisionsbedürftige Übersicht bei HUSEMANN-HILGER), aber wohl kaum, wie HILGER (a. a. O.) meint, «im Zellsafte aller entwicklungsfähigen Pflanzenteile».
Das beste Material zur Darstellung der d-Weinsäure ist noch heute der rohe Weinstein, der als Droge in den Handel kommt. Er bildet gelbliche und rötliche Krusten, die zur Reinigung zunächst in siedendem Wasser gelöst werden. Die geklärte Lösung wird mit Tierkohle und Ton entfärbt und zur Kristallisation gebracht. Aus dem so entfärbten Weinstein wird die Säure mit Schwefelsäure abgeschieden.
Pulpa Tamarindi.
Syn. Fruct. tamarindi, Siliquae indicae — Rohes Tamarindenmus — pulpe brute de tamarins (der Baum: tamarinier de l’Inde) (franz.) — tamarind (der Baum: tamarind tree) (engl.) — tamarinde (holl.) — tamarindo (ital.) — tamarinda (ung.) — tamarindi (fin.) — ὀξυφοῖνιξ (griech.).
Arab.: tamr hindī, andeb (in Cordofan: ardeb), humar, sabárá. — pers.: anbalah — in Indien: amli, imli (hind.), chintz (bomb.) puliyam-pazham (tam.) tentul (beng.) — im Sanscrit: tintidi, amlikā (weitere in WATT, Dict. ec. pr.) — mal.: asam manies oder a. djawa, asem (asem kerandji ist Dialium indum), kamal. — bei den späteren Griechen: βελφηνικήα τεμαρέντι. — Bei ALHERVI (I, S. 601) tamr ulhindî (pers.) — In dem Lehrgedichte des OTHO CREMONENSIS (XIII. Jahrh., vgl. I, S. 627) und bei SERAPION (I, S. 607): thamarindus. — Bei IBN BAITHAR (I, S. 608) stehen außer Tamr hindi auch die Namen: subâr (für den Baum: subâri), humar, hamar (auch für Asphalt benutzt!), hamar heißt im Arab. rot (MARTI). Deutet wohl auf die Farbe der Früchte. — Bei ABU HANIFA: elhumar — bei CONSTANTINUS AFRIKANUS: Oxyfoenicia sunt dactyli Indiae. — Auch in der Alphita und bei BARTHOLOMAEUS (I, S. 655) findet sich Oxi fenica (fincon, inde dactilus indicus vel tamarindus) = dactalus acetosus und auch in Circa instans (I, S. 637), bei JOH. ACTUARIUS und in den mittelenglischen Medizinbüchern aus dem XIV. Jahrh. (I, S. 683) steht Oxyfenica. Der Ausdruck (= palmae acidae) blieb bis ins XVII. Jahrh. erhalten (FLÜCKIGER). Im Mittelalter und noch bei C. BAUHIN auch: Siliqua arabica (Siliqua syriaca ist Ceratonia) — bei RUMPF: Tamarindus C. Bauhini, Tamar sive dactylus Indorum, Palmula indica et deresilde Arabum — in Brasilien: Jutay (PISO). — Tamarindus auch bei RAY, ALPINI und TOURNEFORT — bei RHEEDE: balam pulli.
Etym. Tamarindus von arab.-pers. tamr (tamar chald. u. hebr.) = Palma (Dattel) und hindi = indisch, also indische Palme (Dattel) (so schon von GARCIA DA ORTA erklärt). Vielleicht auch tamr = Frucht überhaupt (PEREIRA) — οξυφοίνικα, Oxifenica = Sauerdattel (φοῖνιξ = Dattel, hier nicht = rot, wie LÉMERY will). — Der Malaie drückt im Namen: Asam (= sauer), manies (= süß) sehr charakteristisch den Geschmack des Fruchtmuses aus.
Stammpflanze und systemat. Stellung. Tamarindus indica L., Gen. pl. I, 581 (Rumph. herb. amb. 2, 90 t. 23), nebst der in Westindien kultivierten kleinfrüchtigen, wenigsamigen, herben Var. occidentalis (T. occidentalis GÄRTNER) — auch die javanische T. ist kleinfrüchtig (TSCHIRCH). Der Autor des Makhzan el Adwija beschreibt zwei indische Arten: die rote süßere, kleinsamige Guzerat-Varietät (die bessere) und die gewöhnliche rötlichbraune. Diese werden in Indien noch jetzt unterschieden. ROXBURGH und DE CANDOLLE unterscheiden T. occidentalis DC. und T. indica DC. als Arten.
Leguminosae, Caesalpinioideae — Amherstieae (die Gattung Tamarindus hat nur eine Art).
Tafel XIII.
Tamarindus indica L. in Java.
(Tschirch phot.)
⇒ GRÖSSERES BILD
Beschreibung der Stammpflanze. Die Tamarinde ist ein immergrüner Baum, der eine Höhe von 25 m erreicht (Taf. XIII) aber langsam wächst. Er braucht viel Licht und ein dauernd warmes, tropisches Klima, nimmt aber, da tiefwurzelig, mit relativ trockenem Boden fürlieb. «Sein schöner, ebenmäßiger Wuchs, die dichtbelaubte und infolge der feingefiederten Blätter doch lichte und reichgegliederte Krone, die den Boden in weitem Umkreis beschattet, die weitausladenden Äste und der elastische, aber feste Stamm geben dem schönen Baum ein prächtiges Aussehn (Taf. XIII). Kraftvoll und doch zierlich, ist er eine herrliche Zierde der Landschaft vollends dann, wenn er im Schmucke seiner zahlreichen wohlriechenden, feingeaderten Blüten prangt oder mit tausenden rehbrauner, an langem Stiele herabhängender Fruchthülsen beladen ist» (TSCHIRCH, Indische Heil- und Nutzpflanzen). Ich traf in Java aber oft Tamarinden ohne Blüten und dann wieder solche mit nur spärlichen. Auch RUMPHIUS sagt: «Flores sunt rari et vagi». Auf den Blattreichtum geht die griechische Bezeichnung δένδρον πολύφυλλον (bei THEOPHRAST) und in Java sagt man: «Er hat Schulden wie der Tamarindenbaum Blätter.» Der bis 8 m im Umfang messende Stamm hat ein sehr geschätztes Holz, das von Insekten nicht angegangen wird.
Fig. 172.
Blüte von
Tamarindus indica
L. im Längsschnitt.
[Nach
Luerssen
.]
Die alternierenden Blätter sind paarig gefiedert, 10–20 jochig, die fast sitzenden, ganzrandigen Fiederblättchen 12–20 mm lang, lineal-länglich, abgerundet gestutzt oder ausgerandet, ungleichhälftig, unterseits blaugrün, die häutigen Nebenblättchen hinfällig. Die Blätter zeigen Schlafbewegung (s. unter Geschichte). Die zygomorphen, hermaphroditen Blüten stehen in endständigen Trauben. Das enge, röhrige, kreiselförmige Receptaculum ist mit dem drüsigen Discus ausgekleidet, der vierzählige Kelch in der Knospe dachig. Von den vier, dem Rande des Receptaculums inserierten, weißlichen, dann blaßgelblichen und abfallenden, häutigen Kelchblättern sind die beiden oberen (hinteren) zu einem breiten, fast ovalen Blatte verwachsen, die beiden unteren (vorderen) sind länglich. Von der ursprünglich fünfzähligen Corolle sind die zwei vorderen Blätter zu pfriemenförmigen Spitzchen abortiert, von den drei hinteren (oberen) ist das mittlere schmäler, fast sitzend und etwas kahnartig zusammengelegt, die beiden seitlichen breit genagelt, alle drei weiß und rot geadert, etwa gleich groß, wellig gekerbt. Von den neun zu einer, oberseits offenen, Scheide verwachsenen Staubfäden sind nur die drei vorderen Kelchstamina fertil, die anderen sechs als spitzchenförmige, an der Spitze der Scheide sitzende Staminodien entwickelt. Der gestielte einfächerige Fruchtknoten trägt einen, wie die Stamina, bogenförmig gekrümmten Griffel mit kleiner gestutzter Narbe und enthält eine ganze Anzahl Ovula (Fig. 172). Die Frucht hängt an einem mehrere Zentimeter langen Stiel. Sie wird sehr verschieden lang (selten über 15 und bis 20 cm, meist viel kürzer, besonders bei den kleinfrüchtigen Sorten). Sie ist länglich, kurz und scharf zugespitzt, meist etwas gekrümmt und mäßig zusammengedrückt, an den Stellen, wo die Samen liegen, meist etwas aufgetrieben, oder gar infolge von Einschnürungen knotig gegliedert. Sie ist ein nicht aufspringendes Legumen, dessen Bauchnaht kaum deutlich hervortritt, mit gelbbraunem oder hellbraunem, fast warzig-rauhem, sehr zerbrechlichem, etwa 0,5 mm dickem Exocarp, das außen bisweilen auf hellem Grunde ein feines dunkles Netzwerk erkennen läßt. Das Mesocarp ist ein weiches Fruchtmus, an dessen äußerem Rande auf der konkaven Rückenseite der Frucht ein derbes Bündel bis zur Spitze verläuft, während auf der konvexen Bauchseite zwei starke und 2–4 zwischen diesen liegende schwächere Bündel verlaufen (Fig. 174), von denen aber nur die stärkeren die Spitze der Frucht erreichen, die 2–4 schwächeren aber meist schon vorher blind endigen. Von allen gehen fast in rechtem Winkel Sekundärnerven ab, die zu Anastomosen führen. Dieses Bündelsystem läßt sich bei der trockenen Frucht oft als grobfaseriges Netzwerk in toto vom Mesocarp außen ablösen. Das Endocarp ist als papierdünne zähe Pergamenthaut entwickelt und zwischen den Samen gefächert. Es kleidet die 1–12 ovalen Fächer der Hülse aus, die innen bisweilen spiegelglänzend erscheinen und je einen glänzend rotbraunen, der Bauchnaht angehefteten, endospermfreien Samen einschließen (Fig. 173).
Früchte bildet die Tamarinde vom zehnten Jahre an. In Java blüht der Baum im November und Dezember zu Beginn der Regenzeit. Die Früchte sind dort im Februar vollreif, was man an der Brüchigkeit des Epicarps erkennt. Sie werden mit Bambusstangen abgeschlagen, was ohne Schwierigkeit möglich ist, da der Fruchtstiel sehr spröde ist (TSCHIRCH). In Vorderindien blüht T. im April und Mai. Ein Baum liefert dort 5–6 maunds (c. 412–494 lbs.) Früchte. In Westindien sind die Früchte im Juni bis August reif (HOOPER). Die Eingeborenen Vorderindiens betrachten die Ausdünstungen des Baumes als schädlich. SEMLER empfiehlt, die Früchte mit der Hand oder die nicht erreichbaren mit einer sog. Pfropfreiserschere zu pflücken.
Fig. 173.
Tamarindus indica.
Radialer Längsschnitt durch die Frucht — schematisch.
[
Tschirch.
]
Fig. 174.
Tamarindus indica.
Frucht geöffnet, das Epikarp (p) abgetragen, so daß das Fruchtfleisch (Mesokarp, m), die Gefäßbündel (f) und ein Same (s) sichtbar werden.
[Aus
Vogl
, Kommentar.]
Die Tamarinde ist ursprünglich im tropischen Afrika bis südlich zum Sambesi einheimisch. Der Baum durchzieht das Gebiet des Senegal, des Niger, Angola und des Tsad-Sees, geht in die Nilländer, durch den äußersten Nordosten Afrikas nach Mosambik bis ungefähr 24° s. B., während er seine Nordgrenze bei ungefähr 14½° n. B. am weißen Nil (nach SCHWEINFURTH schon bei 12° n. B.) erreicht (FLÜCKIGER). Er wurde aber sehr frühzeitig nach Arabien, Indien, Cochinchina, den Philippinen, Java, wie überhaupt nach Südasien gebracht und ist vielleicht sogar dort wie in Nordwest-Australien (F. VON MÜLLER) schon ursprünglich heimisch. Nach Tahiti kam T. schon durch COOK. Nach dem tropischen Amerika, besonders nach den Westindischen Inseln, Mexiko, Ecuador, Guayaquil, Brasilien, Argentinien ist die T. durch die Europäer im XVI. Jahrh. gebracht worden, hier hat sich eine Varietät (s. oben) entwickelt. DYMOCK glaubt, daß die T. in Süd-Indien einheimisch ist. BRANDIS bezweifelt es. Die Pflanze hat jedenfalls viele einheimische indische Namen. CRAWFURD hält sie auch für in Java einheimisch. Sie hat eigene malaiische Namen und spielt im Volksleben eine Rolle. Ich habe sie wild in Java nicht angetroffen. Eigentliche Anpflanzungen, Tamarindenwälder, traf ich nirgends in Süd-Asien, dagegen sehr oft den Baum in Alleekultur (I, Fig. 34) und auch wohl in den Kampongs (Taf. XIII). Dies gilt auch für Vorder-Indien (frequently planted in avenues and topes, HOOPER 1907). Einer der größten Plätze der Erde, der Koningsplein in Batavia, ist von einer Tamarindenallee umgeben. T. ist ein vorzüglicher Schattenbaum. Jetzt ist T. durch Kultur über alle tropischen Länder der Erde verbreitet, aber Versuche, bessere Spielarten in der Kultur zu erzielen, sind nirgends gemacht worden (SEMLER).
Lit. TAUBERT in Engler-Prantl. — LUERSSEN, Med. pharm. Bot. — ROXBURGH, Flor. Ind. III, 215. — BRANDIS, Forest flor. northw. a. centr. India 1874, 163. — BENTHAM, Flor. austral. II, p. 294. — OLIVER, Flor. trop. Africa II, 308. — FICALHO, Plantas uteis da Africa portugueza Lisboa 1884. — CRAWFURD, Dict. of Ind. islands 1856, 425. — HOOPER, Tamarindus Agric. Ledger 1907, Nr. 2. — F. V. MÜLLER, Not. s. 1. végét. de l’Australie. Melb. 1866. — MACFADYEN, Flora of Jamaica 1837, 335. — M. PÉREZ MACIEL, Bot. Min. Agr. Buenos Aires 3 (1905), 110. — DE CLERCQ, Nieuw plantkund. wordenboek. Nederl. Ind. 1909. — Die Kultur ist beschrieben in SEMLER, Tropische Agrikultur II, 209. — Abbild.: TSCHIRCH, Ind. Heil- u. Nutzpfl. t. 49 u. 50, BERG-SCHMIDT, Atlas I. Aufl. t. 9, PABST-KÖHLER, Medizinalpfl., t. 131, NEES, plant. med. t. 343, HAYNE, Arzneigew. X, t. 41, BENTLEY-TRIMEN, Med. plant. t. 92, WOODVILLE, t. 161, BOT. MAG., t. 4563, TAUBERT in Engler-Prantl, Pflanzenfam. III, 3, Fig. 79 und vielfach anderwärts. — Die ersten Abbildungen der T. finden sich in BONTIUS, Histor. nat. Indiae 1658 (I, S. 897) und bei PISO (I, S. 893). — RHEEDE bringt (Hort. malabar. I, t. 23) unter Balam pulli s. Maderam pulli (braman.: sinza) eine gute zweifarbige Abbildung eines fruchttragenden Zweiges, daneben Blüte und Samen sowie eine ausführliche Beschreibung. — RUMPF (Herb. Amb. 2, 90) gibt unter Tamarindus (= Assam djava) eine sehr ausführliche Beschreibung und auf Taf. XXIII eine gute Abbild. eines blühenden Zweiges mit Frucht u. Samen. — Ältere Beschreibungen: RAY, histor. plant. p. 1748. — SLOANE, Cat. pl. Jam. p. 147 (Synonyme). — MARCGRAF, Bras. hist. p. 107.
Pathologie. Den größten Schaden richten an der Tamarindenernte die Affen an, die «reinen Tisch» zu machen pflegen; dann Papageien und andere Vögel, Eichhörnchen und fliegende Füchse, weniger Insekten (SEMLER).
Gewinnung und Handelssorten. Pulpa tamarind. kommt besonders aus Ostindien und Westindien in den Handel. Die Levante scheint nichts von Bedeutung mehr in den Großhandel zu liefern, wenigstens fanden sich 1911 im deutschen Handel weder levantinische noch ägyptische Tamarinden, die zu POMETS Zeit im Handel vorherrschten. Die in Deutschland gebräuchlichen ostindischen, braunen «Calcutta» (black tamarinds) sind dunkelbraun oder fast schwarz und fest, nicht feucht, die in England vorgezogenen westindischen (red tamarinds) heller, gelbbraun oder rotbraun, oft feucht und weniger sauer. Die Endocarphüllen sind bei der westindischen Tamarinde nicht so lederartig, wie bei der ostindischen, die Farbe des Muses und des wässrigen Auszuges heller, der Samengehalt höher, die Gefäßbündel länger und dicker, der Geschmack süßer, die Samen sitzen oft noch zu 2–4 in der Hülle (BRUNNER).
Im deutschen Handel fanden sich 1911 Calcutta- und Madras-Tamarinden und in kleineren Mengen die westindischen Barbados. Die beiden ersteren Sorten, von denen Calcutta meistens die bessere Qualität ist [sie findet sich in Fässern (Oxh.) zu c. 250–350 kg], werden in der Hauptsache zum Ansetzen der Kautabaksaucen gebraucht, gehen aber auch in sehr großen Posten nach Süddeutschland, der Schweiz und Italien, um dort zur Herstellung von Fruchtsäften verwendet zu werden. Für medizinische Zwecke dürften Madras- (in Fässern zu c. 200 kg) und Calcutta-T. weniger verwendet werden, eine größere Verwendung für derartige Zwecke, in der Hauptsache als Abführmittel, finden die westindischen Barbados-Tamarinden, die aber von deutschen Firmen fast garnicht, sondern ausschließlich von englischen Firmen in den Handel gebracht werden (CAESAR und LORETZ).
Der indische Markt unterscheidet mehrere Qualitäten, je nach dem Gehalt an Schalen, Samen und Fasern. Die guten Sorten werden einem Nachreifungsprozeß an der Sonne unterworfen. Die Tamarinden müssen, um ein schönes Aroma aufweisen zu können, genügend lange in Indien liegen bleiben, damit der richtige Gärungsprozeß im Produktionsland stattfindet. Je früher die Verladung der Tamarinden von Calcutta erfolgt, desto weniger haltbar ist meistens die Ware, und auch das Aussehn der zu früh verschifften Ware ist nicht dunkelbraun, sondern fuchsig (CAESAR und LORETZ). Erst durch diesen Gärungsprozeß wird also das frisch hellrotbräunliche Fruchtmus schwarz. In Indien wird das von dem Epicarp und den Samen befreite Mus oft mit 10% Salz gemischt und mit den Füßen zu einer gleichmäßigen Masse geknetet. Diese Pulpa gelangt nicht zur Ausfuhr nach Europa. In Guzerat, Dekkan, Kontan wird das Fruchtmus bisweilen mit Seewasser zu einem breiigen Teig geknetet und dieser in Säcke verpackt (FLÜCKIGER). Mit Zucker werden ostindische Tamarinden nur selten präpariert. In Indien wird T. produziert in Nasick, Poona, Juneer, Kaira, Tullgaum. Am meisten geschätzt ist die Guzeratsorte. Calcutta ist wichtigster Tamarindenhafen für den Export nach Europa, weniger Madras und Bombay. Bombay exportiert viel nach Sind, Persien und dem Roten Meer.
Hamburg empfing 1909: 148600 kg (TUNMANN); Triest importierte 1903 noch 5039, 1904: 3217, 1908: 217, 1904 nur 4 quint Tamarinden.
In Westindien werden die Früchte von der Schale sorgfältig befreit, in Fässern übereinander geschichtet und kochender Sirup darüber gegossen bis das Faß voll ist (oder vorher zwischen die Früchte Zucker geschichtet, WRIGHT). Es ist auch nicht mit Zucker behandeltes westindisches Mus im Handel. Das westindische Tamarindenmus, das, da es keinem Gärungsprozeß wie das ostindische unterworfen wird, rotbräunlich gefärbt ist, gelangt in Fässern aus St. Kitts, Nevis, Antigua, Montserrat, Dominica, Martinique, Barbados, Grenada und Guayaquil vorwiegend nach London. Die brasilianischen Tamarinden werden besonders nach Nordamerika verschifft. Amerika importierte 1897 für 2699 Dollars Tamarinden.
Am oberen Nil (Cordofan, Sennaar, Darfur, Arabien) wird die Pulpa in bis 1 kg schwere Kuchen gepreßt, die an der Sonne getrocknet werden. Diese sind schwarz und fest und außen oft sehr unrein. Sie wurden früher bisweilen als ägyptische Tamarinden im Handel angetroffen und kamen über Alexandrien nach Marseille, spielen jetzt aber nur im afrikanischen Binnenhandel eine Rolle. Ähnliche Kuchen formt man in Senegambien und Arabien. Auf den Märkten in Java und Singapore traf ich sowohl die ganzen Früchte, wie das zu Kuchen vereinigte, in Pisangblätter eingeschlagene Fruchtmus.
Lit. FLÜCKIGER-HANBURY, Pharmacographia. — DYMOCK, Veg. mat. med. West. Ind. — Pharmac. indic. — WRIGHT, Med. pl. of Jamaica. — LUNAN, Hort. Jamaicens. II (1814), 224.
Fig. 175.
Tamarindus indica
L. Querschnitt durch die Fruchtschale. 3–4 Epikarp. 5 Mesokarp. 6–8 und H Endokarp. H Haarschicht, verfilzt.
[Nach
Hallström
.]
Beschreibung der Droge. Die Droge bildet ein nicht sehr appetitlich aussehendes, entweder schwarzbraunes oder schwarzes (Calcutta-T.) oder rotbraunes (westindische T.) Mus, das hauptsächlich aus dem weichen, aber bald hart werdenden Mesocarp (Sarcocarp) der Frucht, das sich schon beim Trocknen der Frucht vom Epicarp ablöst, besteht und in das einmal die derben Mesocarpbündel, dann die papierdünnen, die Fruchtfächer auskleidenden Endocarptaschen und endlich die Samen eingebettet sind. Alle diese Teile treten besonders beim Aufweichen des Muses deutlich hervor. Die Samen sind wenig regelmäßig, verkehrt-eiförmig, rundlich, fast viereckig, etwas zusammengedrückt, braunrot oder rotbraun, glänzend, bis 17 mm breit, bis 8 mm dick, mit schmaler Randfurche, die dem Nabelstreifen entspricht. Die Samen sind auch nach Einweichen in Wasser steinhart und nicht zu schneiden («pisa ipsius saxea fere sunt duritate», J. BONTIUS 1642), sägt man sie aber durch und legt sie in Wasser, so werden sie schneidbar und die äußere Schicht der Samenschale rollt sich an den Samenrändern (nicht im Mittelfelde!) in einzelnen sich kräuselnden Schuppen ab — eine für die Tamarindensamen höchst charakteristische, anatomisch zu begründende Erscheinung. Das Mittelfeld ist etwas eingesunken und zeigt Parallelstreifen. Der etwas dickere Rand ist grobwarzig. Der Samenkern besteht fast nur aus den großen, hornigen, plankonvexen Cotyledonen, zwischen denen ein kleines, etwas zurückgezogenes Würzelchen und eine noch kleinere Plumula sichtbar wird. Das Durchschnittsgewicht der Frucht beträgt 6–10 g. Von 100 Teilen Frucht kommen 41 Teile auf das Fruchtfleisch, 30 Teile auf die Schale und 29 Teile auf die Samen (pulp: 55, seeds: 33.9, shell and fibre: 11,1, HOOPER). 100 Samen wiegen 75,88 g. Der Gehalt der Pulpa an Samen darf 10% nicht übersteigen. K. MÜLLER fand 2 bis 9,8% (in nicht revisionsfähiger Ware 20,6 und 38%), BRUNNER 3,45–37% (in 15 von 21 Mustern unter 10%), ADAM 7–8%. Werden 20 g gut durchgemischtes Tamarindenmus mit 190 g Wasser übergossen und durch zweistündiges Schütteln ausgezogen, so müssen beim Abdampfen von 100 g des Filtrates mindestens 5 g trockenes Extrakt bleiben (Ph. helv. IV). Der Droge dürfen nur geringe Mengen des Epicarps (äußere Hüllschicht, D. A. V) und nur wenige Pilzsporen beigemengt sein. Die Droge schmeckt schwach süßlich und stark sauer und riecht eigenartig (nicht dumpfig!). Man bewahrt sie in Steintöpfen auf. Sie wird leicht hart.
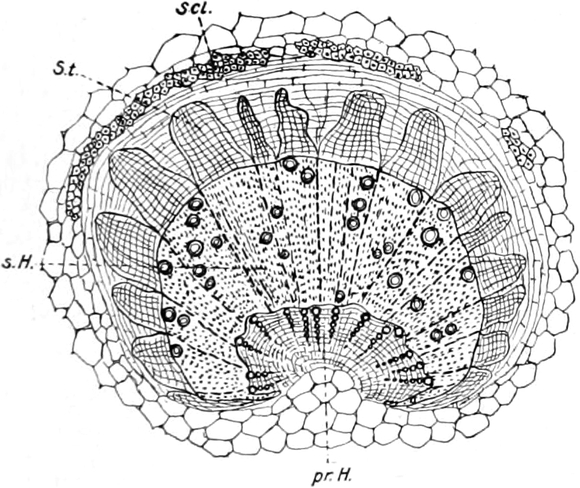
Fig. 176.
Tamarindus indica
L. Querschnitt durch ein Hauptbündel der Fruchtschale aus dem Mesokarp.
[Nach
Hallström
.]
Anatomie. Die Fruchtknotenwand läßt noch die Bauchnaht erkennen, d. h. die Stelle, wo die Ränder des Carpells verwuchsen. Auf der Rückenseite liegt ein großes Bündel, die Mittelrippe des Carpells, gegen die Bauchnaht hin beiderseits je ein etwas kleineres und rechts und links von der Bauchnaht je zwei ganz kleine Bündel — also im ganzen sieben, drei große, bis zur Spitze gehende und vier kleine kurze. Von diesen gehen dann später zahlreiche Zweige ab, die das Fruchtfleisch durchziehen. Die Innenwand wird später von Haaren ausgekleidet. Zwischen den Samenfächern unterbleibt diese Haarbildung und die Endocarpstreifen legen sich mit schwach papillöser Epidermis fest aufeinander (HÄLLSTRÖM). Das Epicarp der reifen Frucht (Fig. 175) besteht zum überwiegenden Teile aus kurzen drei-, vier- oder vieleckigen Sklereïden mit dicker gestreifter und reich getüpfelter Membran und verschieden großem, mit einer braunen, durch Eisenchlorid sich schwärzenden, in Kali aber kaum löslichen Phlobaphenmasse erfülltem Lumen. Außen ist es von einer abschülfernden Korkschicht bedeckt, die aus einem subepidermalen Phellogen hervorgeht, das die außerhalb liegenden Partien abstößt, wodurch die Zeichnung der Oberfläche der Frucht (s. oben S. 530) bedingt wird. In den äußersten kleinen Sklereïden und in dem zwischen die Sklereïden eingestreuten Parenchym finden sich bisweilen wohl ausgebildete monosymmetrische Kalkoxalatkristalle. Die Sklereïden liegen entweder zu Gruppen vereinigt oder isoliert. Die Fruchtschale ist daher in hohem Grade zerbrechlich. Nach Innen zu geht die Sklereïdenschicht in das lockere Parenchym der Mittelschicht der Fruchtschale, das Mesocarp, über, von dem einige Schichten der Schale anzuhängen pflegen, der übrige Teil ist samt den Samen von der Schale abgelöst und liegt als eine kompakte Masse im Innern des Ganzen, einen ziemlichen Zwischenraum zwischen sich und der äußeren Fruchtschale lassend. Diese Mittelschicht der Fruchtschale, das Mesocarp, bildet das sog. «Fruchtmus». Sie besteht aus vielen Zellreihen sehr zartwandiger, parenchymatischer Zellen. Ihre Wand wird durch Jod schwach gebläut (FLÜCKIGER). Betrachtet man das Mus der Droge unter dem Mikroskop in Glycerin oder Öl, so sieht man zahlreiche, meist infolge Pektinbildung in der Zwischenzellsubstanz mehr oder weniger isolierte, 80–160 mik. große Zellen, die einen braunen zuckerreichen Inhalt und häufig auch zahlreiche kleine, 1,5–18 mik. große Stärkekörner enthalten. Daneben findet man drei Kristallformen: derbe, unregelmäßig ausgebildete, gestreckt-prismatische, tafelförmige und um einen Punkt angeordnete nadelförmige Kristalle (TSCHIRCH). Besonders die großen Tafeln des erst in heißem Wasser löslichen Weinsteins treten gut hervor, die anderen Kristalle sind Weinsäure und Zucker, die sich schon in kaltem Wasser lösen. Gefäßbündel durchziehen besonders reichlich die äußersten Partien der Mittelschicht der Fruchtschale, so daß bei dem Ablösen der Mittelschicht von der äußeren Fruchtschale auf ersterer ein reich verzweigtes Netz zarter und gröberer Gefäßbündel oberflächlich aufzuliegen pflegt. Für die Entwicklung von Schimmelpilzen ist dieser feuchte Raum und der gute Nährboden sehr geeignet. Man findet denn auch dort oft zahlreiche Kolonien. Auch in den tiefer liegenden Partien finden sich Bündel. Dieselben sind jedoch meist zarter — auch weniger zahlreich. Die oftmals von Kristallkammerfasern begleiteten Bündel der Tamarindenfruchtschale zeichnen sich durch einen oft ziemlich breiten Bastzellpanzer und viel Libriform aus, demgegenüber die wenigen getüpfelten und Spiral-Gefäße und der Siebteil nur einen kleinen Raum einnehmen. Das große Rückenbündel wird von relativ wenigen Bastzellgruppen begleitet, führt aber in dem mächtigen Holzkörper reichlich Libriform. Auch sein Siebteil ist stark entwickelt (HÄLLSTRÖM). Der innerste Teil der Fruchtschale, das Endocarp, das die Samenfächer als Pergamenthaut auskleidet, ist dreischichtig. Unmittelbar an das Mesocarp nach innen zu schließt sich ein drei- bis fünfreihiger Bastzellpanzer, dessen tangential gestreckte, bis 300 mik. lange, bis 18 mik. breite Zellen ziemlich stark, aber ringsum gleichmäßig verdickt, und mannigfach verbogen, also fest miteinander (gegen tangentialen Zug) verzahnt sind. Diese Bastzellen besitzen große, linksschiefe Spaltentüpfel. An diese Schicht schließt sich eine Zone dünnwandiger Zellen und an diese die silberglänzende, jedes einzelne Samenfach rings auskleidende Haut, die von außerordentlich langgestreckten dünnen, hin und her gebogenen und miteinander verfilzten Zellen (Fig. 175 u. 177) gebildet wird, die sich in der Nähe der Querwände der Samenfächer oft zu einzelnen Fäden isolieren, so daß sich dort ein zartes, durchbrochenes Netz langer Zellen von einer Seite zur anderen spannt. Diese Schicht geht aus den die Fruchtknotenhöhle auskleidenden Haaren hervor (TRÉMEAU). Calciumoxalat (FLÜCKIGERS Quarzkörnchen?) findet man außer in den Kristallkammerfasern der Bündel (s. oben) auch in der an die Pergamenthaut angrenzenden Schicht des Mesocarps, weniger im übrigen Mesocarp (HÄLLSTRÖM).
Fig. 177.
Tamarindus indica.
Die Haarschicht des Endokarps. Beginnende Verfilzung.
[Nach
Hällström
.]
Die Samen werden von einer Testa umhüllt, deren äußerste Schicht aus c. 190 mik. langen und 8–11 mik. breiten, radial gestellten, mit spaltenförmigen Lumen versehenen Palissadensklereïden gebildet wird. Diese Sklereïdenschicht ist an dem Rande des Samens einreihig. Die Zellen besitzen hier eine sehr gegen Wasser empfindliche Wand, so daß sich Teile der Schicht im Wasserpräparat abrollen. Dadurch wird die oben (S. 533) erwähnte Erscheinung bedingt. Ihre Wand ist außen braun, innen hell. An dem breiten eingesunkenen Mittelfelde der Breitseiten des Samens (s. oben S. 533) ist die Palissadenschicht zweireihig. Außen liegt eine gefärbte, innen eine farblose Palissadensklereïdenreihe, die genau aufeinander passen, so daß sich das Spaltenlumen durch beide fortzusetzen scheint. Man kann aber zwischen beiden eine zarte Trennungsmembran sehen. Das erweiterte Lumen der inneren Reihe enthält kleine Körnchen. Die Palissadenschicht des Mittelfeldes ist nicht empfindlich gegen Wasser (s. oben S. 533). Unter der Palissadensklereïdenschicht folgt eine Zone heller, bisweilen knochenförmiger oder doch radialgestreckter, oft chlorophyllführender Zellen mit stark quellbarer Wand. Die knochenförmigen Zellen sind am eingesunkenen Mittelfelde besonders hoch und gut ausgebildet. Dann folgt eine verschieden mächtige Schicht kleiner ausgebuchteter oder sogar sternförmiger derber Zellen, die einen rotbraunen, in Wasser unlöslichen Inhalt führen und viele Interzellularen zwischen sich lassen (VOGL stellt ihren Inhalt den Inklusen der Ceratonia an die Seite). Die innerste Schicht endlich, die sich in Wasser ebenfalls stark streckt, wird von großen, dünnwandigen, in den inneren Schichten oft radialgestreckten Zellen gebildet, die ebenfalls einen rotbraunen Inhalt führen. Zwischen den beiden Schichten liegt bisweilen eine Zone obliterierter Zellen. Die beiden den Samenkern bildenden plankonvexen Cotyledonen besitzen sehr stark verdickte, mit großen Tüpfeln versehene Zellen, deren sekundäre Wand sich mit reinem Jod nicht (NÄGELI), wohl aber mit jodwasserstoffhaltiger Jodlösung bläut, die also aus Amyloid besteht (vgl. oben S. 263) und deren enges Lumen vollgepfropft ist mit in Ölplasma (TSCHIRCH) eingebetteten kleinen, nur 4–7 mik. großen Aleuronkörnern. Procambiumstränge durchziehen das Interzellularen führende Gewebe. Erhitzt man den Schnitt mit Wasser zum Sieden, so lösen sich die sekundären Amyloidmembranen und es bleibt nur das Netzwerk der primären Membranen und die Öltropfen übrig. Das Amyloid der Tamarinden verhält sich also ähnlich wie Lichenin (s. oben S. 263). Die c. 3 mm lange kegelige Radicula trägt oben die c. 1 mm lange Plumula, an der der kegelige Vegetationspunkt und eine Gruppe junger Blattanlagen sichtbar ist, die schon deutlich die Fiederung zeigen (Fig. 173).
Lit. NÄGELI, Reakt. von Jod auf Stärkekörner und Zellmembranen. Sitzungsb. d. Münch. Akad. 1863 (Buchn. Rep. 13 [1864] 145). — TRÉMEAU, Rech. s. l. devel. du fruit et de l’orig. d. la pulpe d. l. casse et du tamarin. Thèse Paris 1892. — K. H. HÄLLSTRÖM, Z. Entwickg. d. Fruchtwand v. Cer. Sil. u. Tamar. ind. Ber. d. pharm. Ges. 1910, 446. — VOGL, Commentar 1908. — PAMMEL, Journ. appl. Micr. I, 37.
Chemie. Der charakteristische Bestandteil der Tamarinden ist der Weinstein, das primäre Kaliumsalz der d-Weinsäure (S. 527).
Der Weinstein war schon im Altertum bekannt und wurde auch zur Darstellung von Pottasche benutzt. Für Faex vini, τρύξ οἴνου, kam im XI. Jahrh. der Name Tartarum, dann Tartarus auf, welches Wort wohl aus dem arabischen durdijjᵘⁿ umgebildet und dann umgedeutet wurde (durdijj = Bodensalz, sowohl beim Öl wie beim Wein, in tartarus = Unterwelt). MARGGRAF fand in ihm 1764 das Alkali. SCHEELE zerlegte 1769 das Calciumtartrat und isolierte die Weinsäure (Sal essentiale Tartari), die er auch in den Tamarinden nachwies. Aber bereits ANGELUS SALA, dem wir eine Tartaralogia verdanken (I, S. 868), hatte (1647) Weinstein im eingedampften Auszuge der Tamarinden beobachtet und CORNETTE sowie DE LASSONE hatten sein Vorkommen in den T. bestätigt. Weinsäure neben Weinstein fand schon DE LASSONE in den T. SCHEELE erkannte sie 1770 als eine besondere Pflanzensäure, die er in den T. nicht von Citronensäure und Apfelsäure begleitet fand (RETZIUS erhielt 1776 Weinsäure rein und kristallisiert, I, S. 967).
VAUQUELIN zeigte 1790, daß der ausgepreßte Saft von Tamarinden (und anderen Früchten) in der Ruhe zu einer zitternden durchscheinenden Gallerte erstarrt. Das Pektin, von VAUQUELIN gélatine (gelée végétale) genannt, von BRACONNOT 1834 in Pektin umgetauft, wurde also in der Tamarinde entdeckt. VAUQUELIN fand in Prozenten: 12,51 Zucker, 5,11 Gummi, 6,25 Gélatine, 9,4 Citronensäure, 1,56 freie Weinsäure, 3,25 Weinstein, 0,42 Apfelsäure, 37,5 Matières féculentes, 24 Wasser; SCHEELE fand keine Citronensäure (s. oben). FLÜCKIGER-HANBURY geben kleine Mengen an (FLÜCKIGER 1889: 7,17%); die Angabe NESSLERS, daß Tamarinden 13,5% davon enthalten, beruht wohl auf einem Beobachtungs- oder Rechenfehler. Die bei der Destillation mit verd. Schwefelsäure übergehende Ameisensäure, Essigsäure (GRÜNZWEIG) und (in Spuren) Buttersäure (GORUP-BESANEZ) betrachten die meisten Autoren als aus der Weinsäure (und Citronensäure) bei der Gärung hervorgegangen, also als sekundäres Produkt, da Weinsäure bei der Oxydation diese drei Säuren liefert. 1 g der im Handel befindlichen Pulpa vermag meist 14–17 ccm n/10 Natron zu neutralisieren (FLÜCKIGER). Bei der Dialyse des Muses dialysiert vornehmlich Weinstein und im Dialysator bleibt das Pektin (FLÜCKIGER, TSCHIRCH).
K. MÜLLER fand in der von den Samen befreiten Pulpa von Calcutta T. 21,92 bis 32,58 (im Mittel 27)% Wasser, 12,2–20,2 (M. 16,2)% unlöslichen Rückstand, 4,66–6,01 (M. 5,27)% Weinstein, 5,29–8,80 (M. 6,63)% Weinsäure, 0,64–3,95 (M. 2,20)% Citronensäure (+ Apfelsäure, die in sehr geringer Menge vorhanden). 1 g brauchten im Mittel zur Neutralisation 17,6 n/10 Ammon. Die wasserfreie Pulpa enthielt im Mittel 7,2% Weinstein und 9,09 Weinsäure. BRUNNER fand (1891) in Calcutta T. (und einer Sorte westindischer T.) 20,4–29,27 (22,79)% Wasser, 29,05–56,13 (21,53)% Extrakt, 12,16–21,52 (15,42)% Cellulose, 0,66–4,68 (5,37)% Schleimstoffe, 14,93–22 (20,47)% Zucker, 3,6–5,87 (4,62)% Weinstein, 4,29–7,92 (6,84)% Weinsäure, 0,78–3,08 (3,72)% Citronensäure, Spuren Apfelsäure (nicht regelmäßig). Die Asche des Löslichen betrug: 2,81–4,87%, die des Unlöslichen 0,721–2,27%. Schwermetalle waren nicht nachweisbar. BABO und MACH erhielten im Mus 34,33% Zucker als Invertzucker berechnet, 15,51 freie Säure auf Weinsäure berechnet, 6,61 Weinstein, 8,23 freie Weinsäure, 4,4 Apfelsäure, keine Citronensäure, 3,3 Asche. Auch ADAM erhielt (1905) keine Citronensäure, dagegen mehr l-Apfelsäure als die früheren Autoren und etwas Milchsäure und Essigsäure. ADAM fand in kernfreiem Mus: Acidität (als Weinsäure ausgedrückt): 15,4%, Weinstein 7,74%, Weinsäure im Weinstein 6,17%, freie Weinsäure 10,18%, hieraus Gesamtweinsäure berechnet 16,35%, flüchtige Säure, als Essigsäure, 0,014%, Milchsäure 0,465%, Apfelsäure + Milchsäure, als Apfelsäure berechnet, 2,01% — in Wasser unlöslich 12,36, Wasser 30,5, Asche 2,89, Rohprotein 3,22, Invertzucker 24,73. Die Lösung dreht links, nach Vergären bleibt eine schwache Rechtsdrehung bestehen. In 100 T. Fruchtfleisch javan. Tamarinde fand PRINSEN GEERLIGS 5,81 Dextrose und 2,51 Lävulose; Saccharose fehlte. Eine andere Analyse javan. T. von BOSZ (1910) ergab dagegen 41,91% reduz. Zucker, keine Saccharose, 0,44% Fett, 8,16% Stärke, 26,9% Wasser, 3,03% Asche.
Die Asche der Pulpa tamarindi enthält bisweilen Kupfer (über die Verbreitung des Kupfers bei Drogen vgl. TSCHIRCH, Das Kupfer vom Standpunkt d. gerichtl. Chem. usw. Stuttgart, Enke 1893).
REMEAUD untersuchte aus Früchten von Indo-China selbst dargestelltes Tamarindenmus. Er fand in 100 g ganzer Frucht: Epicarp und Gefäßbündel 24,35, Endocarp: 7,76, Samen 37,07, Pulpa 29,31. Die Pulpa enthielt:
In 100 g Präparierte Pulpa Gereinigte Pulpa Rohe Pulpa ohne Samen
Trockenes Extrakt 62,831 73,04 73,015
Wasser (und bei 100° flüchtige Bestandt.) 37,169 26,96 26,965
Asche 2,816 3,259 3,198
Unlöslich in Wasser 6,246 7,078 12,348
Gesamtsäure (auf Weinsäure berechnet) 11,729 15,340 15,888
Weinstein 6,055 7,340 6,575
Phosphorsäure 0,248 0,375 0,275
And. Säuren (nicht bestimmt, auf Weinsäure berechnet) 3,603 5,378 5,906
Invertzucker 42,307 34,284 32,000
Saccharose 0,669 0,460 —
Pektin 0,352 — 1,379
Es ist also auch heute noch nicht sicher festgestellt, ob Tamarinden Citronensäure enthalten oder nicht. Nach einem vorläufigen Versuche zu urteilen, halte ich ihr Vorkommen in den ostindischen T. des Handels für zweifelhaft. Vielleicht wird die ursprünglich vorhandene Citronensäure durch den Gärungs- bzw. Nachreifungsprozeß (oben S. 532) zerstört.
DIETERICH fand (1894) in kernfreiem Mus: 10,83–16,10% «Säure» (durch Titration ermittelt und auf Weinsäure berechnet), 19,5–34,26% Zucker und 41,7–57,37% Extrakt. 1904 in Pulpa Tamar. cruda: 3–12% Kerne, 88–97% kernfreie Pulpa, 35–49,51% bei 100° getrocknetes wässeriges Extrakt, 9,66–13,85% «Weinsäure», 20–37,4% Invertzucker.
Gute Tamarinde sollte nicht mehr als 15% Zellulose und 22% Wasser enthalten und nicht weniger als 45% Extrakt geben.
Die Substanz, welche die abführende Wirkung bedingt, ist unbekannt. SOUBEIRAN und REGNAUD führen sie auf den Weinstein, die Säuren und ein (unbekanntes) principe résinoide zurück. Doch dürfte auch der Zucker daran beteiligt sein.
Die Samen (die Samenkerne) enthalten in Prozenten: 10,5 (9,35) Wasser, 13,87 (18,06) Eiweiß, 4,5 (6,6) Fett, 63,22 (62,88) Kohlehydrate, 5,36 (0,66) Faser, 2,55 (2,45) Asche (HOOPER). Ölgehalt nach (SCHÄDLER) 15–20%. Der Samenkern gibt, da er Amyloid enthält, mit Wasser gekocht eine dickliche, mit Jod sich bläuende Lösung (s. Anatomie), die bei der Hydrolyse Galaktose, beim Behandeln mit Salpetersäure Schleimsäure liefert. Das Öl des Samen scheint in den (94,9%) Fettsäuren Arachinsäure zu enthalten. Säurezahl: 0,84, Verseifungszahl: 183, Jodzahl: 87,1 (HOOPER).