I. Kohlehydratdrogen. (continued 9)
Reading edition
In die Gruppe der Ligninomembranindrogen gehören viele Pflanzenfasern, die aus äußeren Gründen schon oben (S. 253) abgehandelt wurden, ferner alle Hölzer, die nicht, sei es durch ihren Gehalt an einem Farbstoff (Campeche), einem Harz (Guajac) oder einem Bitterstoff (Quassia) oder einem anderen differenten Stoffe in eine andere Gruppe gebracht werden müssen. Diese sog. indifferenten Hölzer spielen aber in der Medizin so gut wie gar keine Rolle mehr. Das einzige, das noch da und dort verwendet wird, ist das Lignum juniperi (über Juniperus vgl. S. 44). Neuerdings haben Holzwolle und Holzmehl zu anderen Zwecken, nämlich als Verbandmaterialien einige Bedeutung erlangt. Zu Holzwollwatte wird Holzschliff verwendet, zu Zellstoffwatte sog. Holz- oder Strohzellulosen. Die Waldwolle wird als Nebenprodukt der Kiefernadelöl- und Kiefernadelextraktbereitung gewonnen. Sie besteht aus den «destillierten» Kiefernadeln. Über Torfwatte orientiert eingehend ROYER, L’ouate de tourbe et ses applications in Trav. d. labor. de mat. méd. Paris VI. 1910 (m. zahlr. anatom. Abbild.).
In der Technik spielt die Holzsubstanz eine große Rolle bei der Herstellung von Papier, zu dessen billigen Sorten (Zeitungspapier) ausschließlich oder als Hauptbestandteil Holzschliff verwendet wird, die daher stets auf Phloroglucin und Anilinsulfat reagieren. Neben diesem sog. Holzstoff wird aber auch «chemischer Holzstoff» sog. «Zellulose» benutzt, die aus dem Holzstoff (meist geraspeltem Coniferen- aber auch Laub-Holz) durch Behandeln mit Natronlauge unter Druck oder Calciumbisulfitlösung (MITSCHERLICH), oder Kalkmilch und schwefliger Säure unter Druck (ARCHBOLD), oder Magnesiumsulfit (ECKMAN), oder Schwefelnatrium erhalten wird.
Die Erfinder des Holzschliffs sind F. G. KELLER in Kühnheida (Erzgebirge) und H. VÖLTER in Heidenheim (1852), der Erfinder der Natronzellulose ist A. UNGERER in Semmering bei Wien (1869–1871), der Erfinder der Sulfitzellulose der Amerikaner TILGHMAN (1866). Das Verfahren wurde dann Anfang der siebziger Jahre praktisch durchgeführt von A. ECKMANN, C. KELLNER und A. MITSCHERLICH, die unabhängig voneinander arbeiteten (WIESNER).
In den heutigen Papieren findet man neben Lein, Hanf, Alfa (Halfa), Jute und Baumwolle, Nadelholz-Holzschliff, Laubholz-Holzschliff, Nadelholzzellulose und Laubholzzellulose. (Über Papier vgl. auch oben S. 256.)
Dann ist auch nicht ohne Erfolg versucht worden aus Holz Alkohol darzustellen, was an sich keinen Schwierigkeiten begegnet, da ja die Zellulosine bei der Hydrolyse Zucker liefern. Das Verfahren ist aber zurzeit noch nicht billig genug. Auch die Verarbeitung auf Zucker ist versucht worden, jedoch ohne jeden Erfolg (LIPPMANN).
Lit. SCHUBERT, Zellulosefabrikation 1897 und Holzstoff- u. Holzschlifffabrikation 1898, sowie Praxis d. Papierfabrikation 1897. — WILHELM und ZEISEL in Wiesner, Rohstoffe. 2. Aufl. — A. MEYER, Grundlagen u. Methoden f. mikrosk. Unters. d. Pflanzenpulver 1901. — C. PIEST, Die Zellulose, ihre Verarbeitung u. ihre chem. Eigensch. 1910. — Der technisch verwendeten Hölzer: NÖRDLINGER, Technische Eigenschaften d. Hölzer. Stuttgart 1860. — SANIO, Vgl. Unters. über die Zusammensetz. d. Holzkörpers. Bot. Zeit. 1863. — DE BARY, Vgl. Anatomie. — KRAH, Über d. Verteil. d. parenchymat. Elemente im Xylem u. Phloëm d. dikotylen Laubbäume. Berlin 1883. — MOELLER, Die Rohstoffe d. Tischler- und Drechslergewerbes 1883, Nutzhölzer in DAMMERS Lexikon und Artikel Holz in Realenzyklopädie d. ges. Pharm. — R. HARTIG, Die anatom. Unterscheidungsmerkmale d. wichtigeren in Deutschl. wachsend. Hölzer. 1890. — WIESNER a. a. O. — MEYER a. a. O. — HANAUSEK a. a. O.
5. Pektino-Membranindrogen.
Der Name Pektin rührt von BRACONNOT her, der (1825) die Gallertsubstanz der Früchte erst Pektinsäure (von πηκτός = geronnen), dann (1831) Pektin nannte (GUIBOURT sprach von Grosselin). Ob das Pektin eine Membransubstanz ist oder nicht, war bis vor kurzem noch nicht ganz sicher. Einige suchten es im Zellinhalte, andere in verschiedenen Teilen der Membran. Die Untersuchungen, die ich 1907 mit ROSENBERG durchgeführt habe, haben die Zweifel beseitigt: es geht aus der Interzellularsubstanz hervor, weder die sekundäre Membran noch der Zellinhalt sind an seiner Bildung beteiligt. Außer PAYEN verlegen auch MANGIN, KABSCH, VOGL, WIESNER, HERZFELD die Pektinbildung in die Mittellamelle. Die Interzellularsubstanz muß nahe verwandt mit dem Pektin (der Pektinsäure der Autoren) sein. Aber nicht immer geht sie in Pektin über. Es scheint, daß dazu bestimmte Bedingungen erfüllt sein müssen, wie sie besonders in reifenden Früchten und einigen Wurzeln eintreten. Gewöhnlich bezeichnet man die in Pektin übergehende Substanz als Pektose (FRÉMY). Ich nenne sie Protopektin. Darnach würde also die Interzellularsubstanz vielleicht immer, wenigstens bei den pektinbildenden Pflanzenteilen, aus Protopektin bestehen. In reifenden Früchten kann man den Übergang des Protopektins, das in Wasser und auch in Kupferoxydammoniak unlöslich, in 2% Natronlauge (nach Vorbehandlung mit Salzsäure) und in Ammoniumzitrat aber löslich ist, in Pektin, das sich in konz. Zuckerlösungen löst, durch mikrochemische Reagentien verfolgen. Während sich nämlich Protopektin (Pektose FRÉMY, pektinsaurer Kalk MANGIN) leicht mit Jodgrün, HOFMANNS Violett, Naphthylenblau, Ammoniumrutheniumsesquichlorid (Rutheniumrot, Ru2Cl6·4 NH4Cl) färbt (MANGIN) — am besten reagiert Neutralviolett und Rutheniumrot in sehr verdünnter Lösung (ROSENBERG) —, verschwindet das Farbstoffspeicherungsvermögen mit fortschreitender Pektinbildung. Wenn die Pektinmetamorphose, wie ich diesen Vorgang genannt habe, abgeschlossen ist — was beim Reifen der Früchte eintritt —, so ist das Endprodukt in Zuckerlösung löslich bzw. gelatiniert nach dem Erhitzen mit Zuckerlösung (TSCHIRCH und ROSENBERG).
Über die chemische Beschaffenheit des Pektins, das wohl mit der Pektinsäure anderer Autoren bzw. dem sog. Calciumpektat identisch ist, sowie des Protopektins wissen wir wenig, doch verhalten sie sich jedenfalls wie Zellulosine. SCHEIBLER erhielt bei der Hydrolyse der Metapektinsäure der Rüben Arabinose (Pektinose), HERZFELD aus Rübenpektin, JAVILLIER aus Quittenpektin Arabinose und Galaktose. Ebenso fand MÜNTZ Galaktose. Auch das Pektin der Enzianwurzel und der Hagebutte lieferte diese beiden Zucker, das der Apfelsinen d-Glukose, Galaktose und l-Xylose; das der Kirschen, Äpfel, Johannisbeeren, Reineclauden, Rhabarberstengel und Mohrrüben noch andere Hexosen und Pentosen (TROMP DE HAAS und TOLLENS). Jedenfalls erhält man bei der Oxydation z. B. des Rübenmarks mit Salpetersäure viel Schleimsäure, das Oxydationsprodukt der Galaktose. Etwas Xylan enthält das Pektin der Äpfel (BAUER) und in vielen anderen Pektinen ist ein d-Galaktoxylan enthalten (BAUER, PRINSEN-GEERLIGS). Die Pektine liefern also bei der Hydrolyse Pentosen und Hexosen, enthalten also Pentosane und Hexosane, vorwiegend Galaktoaraban und Arabangruppen, sind also zu den Hemizellulosen zu rechnen. Sie reagieren schwach sauer und man trifft daher auch Säuren unter den Spaltungsprodukten. TOLLENS vermutet, daß die Pektine ursprünglich neutrale Laktone oder Ester den Glykosidosäuren nahestehender, kohlehydratartiger Substanzen sind, die in Berührung mit Alkalien leicht in die Salze der betreffenden Säuren übergeben. CROSS hält sie eher für lösliche, unbeständige Übergangsformen der Hemi-, Oxy- und Lignozellulosen.
Welche Rolle die Erdalkalien spielen, ist noch unaufgeklärt. Wahrscheinlich ist Kalk, der ja auch in vielen Schleimmembranen (Laminaria, Linum, Cydonia), in der resinogenen Schicht und den Gummis auftritt, ein regelmäßiger Bestandteil der Pektine. MANGIN ist der Ansicht, daß die Pektosen junger Zellwände mit der Zeit in Pektinsäuren übergehen, die Kalk aufnehmen und in Calciumpektate übergehen; DEVAUX meint jedoch, daß auch ältere Mittellamellen aus Pektosen bestehen. Durch andauerndes Kochen des Pektins (oder der Pektose) mit Wasser entsteht das sauer reagierende Parapektin, das mit Wasser aufquillt und 30% Schleimsäure, sowie 14,2% Furol liefert, also ebenfalls Galaktose und Arabinose liefernde Gruppen enthält (Araban, γ-Galaktan?). Der Pektinsäure gibt FRÉMY die Formel: C32H44O30, REGNAULT: C12H16O11, MULDER: C12H16O10, CHODNEW: C14H22O14.
Pektosen werden schon in der Kälte leicht hydrolysiert, wobei Pektinsäuren und Arabinose entsteht. Ebenso wirkt die Pektinase, die auch das Calciumpektat weiter spaltet (BOURQUELOT und HÉRISSEY). Der unlösliche Membranbestandteil, der aus Pektin, Parapektin und Metapektinsäure entsteht, wurde, wie erwähnt, Pektose genannt. Der Name ist irreführend, da er eine Zuckerart vermuten läßt, und sollte fallen gelassen und durch Protopektin ersetzt werden. Pektin wird durch Alkohol koaguliert, auch zahlreiche Pflanzenauszüge (wie solche der Kartoffeln, der Zuckerrüben usw.) koagulieren das Pektin, wobei ein Enzym (Pektase) in Aktion treten soll (?), das aber nur in Gegenwart von Ca-, Sr- oder Ba-Salzen und nicht in saurer Lösung wirkt. Die Pektinase soll das Gelatinieren hindern (BOURQUELOT). Doch bewirken schon die Calciumsalze allein die Fällung in Form von Pektinaten. FRÉMYS und HERZFELDS Pektin ist optisch-inaktiv, ANDRLIKS Pektin dreht 3–4 mal stärker rechts als Rohrzucker, und die Pektine von BOURQUELOT und HÉRISSEY zeigen Rechtsdrehungen von +82,3 bis +194,1. Alle halten Pektin für in Wasser löslich.
ROSENBERG und ich konnten weder durch kalte noch durch heiße Extraktion von Früchten ohne weiteren Zusatz eine in der Kälte gelatinierende Lösung erhalten — auch nicht wenn die Lösung eingedampft wurde. Wohl aber erhält man leicht eine Gelatine, wenn man die Früchte oder einen heißen Auszug derselben unter Zuckerzusatz kocht und die Flüssigkeit erkalten läßt. Diese Pektingelatine ist entweder eine feste Pektinzuckerlösung oder eine Pektinzuckerverbindung.
Immerhin scheint es besonders nach FRÉMYS Versuchen möglich, daß auch andere Substanzen, wie Zucker, Gelatinebildung bewirken; ob jedoch das Enzym Pektase ein solcher Körper ist, erscheint noch zweifelhaft. Für die Praxis der Fruchtgeleefabrikation kommt aber wohl nur Zucker in Betracht. Da Zuckerlösung das Pektin in der Pflanze zum Quellen und Gelatinieren bringt und dadurch die Zellen des Fruchtfleisches voneinander gelöst werden, so hat vielleicht die Zuckerbildung in den Früchten den Zweck, das Fruchtfleisch aufzulockern und so den Zerfall der Frucht und das Herauslösen der Samen zu beschleunigen. Die sog. «Auskleidungen der Interzellularen», die oft als Knöpfe oder Stäbchen in den Interzellularraum ragen (s. hinten Lit.), sind ebenfalls Pektin (pektinsaurer Kalk, MANGIN) und auch die resinogene Schicht der schizogenen Sekretbehälter (TSCHIRCH) muß Beziehungen zum Pektin haben. Da Pektin meist als Protopektin die Zellen miteinander verkittet, müssen alle Substanzen, welche Protopektin lösen, z. B. SCHULZEsche Macerationsflüssigkeit, die Zellen isolieren. Aber auch Bakterien vermögen dies zu tun. Bei der sog. Flachsröste (s. S. 254) werden die Leinstengel in faulendes Wasser gestellt und hier wirken nun die Bakterienprodukte lösend auf das Protopektin. Es entsteht eine Auflockerung des Gewebes und eine Isolierung der Fasern. WINOGRADSKY fand, daß der Bazillus der Flachsröste alle Pektinsubstanzen in Gegenwart stickstoffhaltiger Nährböden «vergärt». Beziehungen des Gummis zu den Pektinsubstanzen zeigt die Metapektinsäure, die SCHEIBLER durch Behandlung von «Rübenmark» (d. h. des Grundparenchyms der Rübe) mit Alkalien erhielt — sie entsteht auch beim Kochen von Rübenmark mit verdünnter Oxalsäure — und die er für identisch mit Arabinsäure hält. Zu den Pektinstoffen steht jedenfalls auch das Pararabin REICHARDTS (s. Agar), dem er die Formel C12H22O11 gibt, in Beziehung und THOMSENS Holzgummi ist wohl identisch mit dem Pektin (aus Holz) von POUMARÈDE und FIGUIER, die glauben, daß Pektin und Zellulose ursprünglich von gleicher Zusammensetzung waren.
Die Grenze zwischen Pektin- und Schleimmetamorphose der Interzellularsubstanz ist oft verwischt (vgl. Fruct. Sambuci, Fig. 19). Überhaupt finden sich mancherlei Übergänge in den Membranen, die offenbar nur selten ganz einheitlich sind. Ein solches Übergangsgebilde scheint die Callose MANGINS zu sein, die er zuerst im Callus der Siebplatten fand. Sie ist unlöslich in Kupferoxydammoniak, gibt keine Chlorzinkreaktion, ist leicht löslich in 1% Natronlauge, unlöslich in kalter Alkalikarbonatlösung; die Protopektinreagentien (s. oben) versagen, Korallinsoda und Anilinblau färben.
Lit. PAYEN, Ann. chim. phys. (2), 26 (1824), 329; Rec. sav. étrang. (2) IX (1846), 148, Compt. rend. 1856. — BRACONNOT, Ann. chim. phys. 28 u. 30 (1825); dann ebenda 47 (1831) und 50 (1832). — GUIBOURT, Schweigg. Journ. 1825. — FRÉMY, Journ. pharm. chim. 26 (1840), 568, Lieb. Ann. 67 und Compt. rend. 1847. Hauptarbeit: Ann. chim. phys. (3) 24 (1848) 5; Compt. rend. 48, 203; Journ. pharm. (3) 36 (1859) 5. — CHODNEW, Lieb. Ann. 51, 355. — MULDER, Journ. pr. Chem. 14, 285. — POUMARÈDE et FIGUER, Compt. rend. 1847 u. Journ. pr. Chem. 12, 31. — STÜDE, Lieb. Ann. 131, 250. — SCHEIBLER, Ber. d. chem. Ges. I (1868), 58 und 108; 6 (1873) 612. — MÜNTZ, Sur l’existence des éléments du sucre de lait dans les plantes. Ann. phys. chim. 10 (1887), 566. — HERZFELD, Chem. Zentralbl. 1891, 618. — BAUER, Landw. Versuchsst. 38 (1891) und 41 (1892), 477. — L. MANGIN, Compt. rend. 107 (1888), 109 (1889), 110 (1890), 111 (1891), 115 (1892), 116 (1893); Bull. soc. bot. 36 (1889), 274, 38 (1891), 39 (1892). Journ. de bot. 1891, 1892 und 1893 und Sur la callose, nouvelle substance fondamentale existant dans la membrane. Compt. rend. 110 (1890). — BOURQUELOT, Compt. rend. 128 (1899), 1241. — BOURQUELOT et HÉRISSEY, Compt. rend. 127 (1898), 191; Compt. rend. soc. biol. 1898, 777; Journ. chim. phys. 9; Journ. pharm. 7 (1898) und 9 (1899) 281. — BERTRAND u. MALLÈVRE, Compt. rend. 119, 120, 121. — BAUER, Chem. Zentralbl. 1901, 196. — DEVAUX, Soc. phys. et nat. de Bordeaux 3 (1903). — TSCHIRCH, Über Pektin und Protopektin. Ber. d. pharm. Ges. 1907, 237. — E. ROSENBERG, Über d. Pektinmetamorphose. Diss. Bern 1908 (mit 9 Taf.). — Pektinanalysen bei REICHARDT, Arch. d. Pharm. 209 (1876), 97 und 210 (1877) 116, MARTIN in SACHSSES Phytochem. Untersuch. 1880, BAUER, Journ. pr. Chem. 30, 369 und TROMP DE HAAS und TOLLENS, Lieb. Ann. 286 (1895), 278. — TOLLENS, Kurzes Handb. d. Kohlenhydrate. 2. Aufl. 1898. — LIPPMANN, Chemie der Zuckerarten 1904. — CZAPEK, Biochemie (dort die Lit.). — Auskleidungen der Interzellularen: DE BARY, Anatomie. — RUSSOW, Über d. Auskleid. d. Interzellularen. Sitzungsb. d. Dorpat. Naturf. Ges. 1884, 19. — GARDINER, Nature 1885, 390. — SCHAARSCHMIDT, Bot. Zentralbl. 18 und 19. — SCHENCK, Ber. d. d. bot. Ges. 3 (1885) (dort weitere Literatur). — VAN WISSELINGH, Sur les revêtements des espaces intercellulaires. Arch. Néerland. 21.
Die vornehmlich als Genußmittel benutzten Fruchtgelees, die sämtlich pektinreich sind (s. oben), werden in der Medizin nur als diätetische Heilmittel benutzt. Ihr Heilwert beruht nur zum Teil auf dem Pektin. Besonders kommt Quitten- und Himbeergelee in Betracht. (DIOSKURIDES nennt eine Menge Krankheiten, bei denen z. B. Quitten benutzt wurden.) Man kann durch richtiges Abstimmen des Zuckerzusatzes die Ausbeuten an Gelee vermehren und sich pektinreiche Geleegrundlagen durch Aufkochen der Preßrückstände der Früchte mit Zuckerlösung darstellen. Man kann die Fruchtgelees auf einen unzulässigen Zusatz von Gelatine dadurch prüfen, daß 5–10 g Gelee mit dem gleichen Gewicht Wasser gelöst, die Lösung mit 100 ccm Alkohol versetzt und im getrockneten und gewogenen Niederschlag der Stickstoff bestimmt wird. Während der getrocknete Niederschlag bei normalem Gelee nur 13 bis 28% Stickstoffsubstanz enthält, steigt der Gehalt bei Gelatinezusatz auf 45% (BÖMER, Chem. Zeit. 19). Ungereinigtes Agar ist durch Diatomeen nachweisbar (MARPMANN). Gereinigtes Agar dadurch, daß man 10–20 g Gelee mit dem gleichen Gewichte Wasser verdünnt, mit 100 ccm Alkohol versetzt, den Niederschlag mit Alkohol wäscht, trocknet und wiegt und dann mit soviel heißem Wasser löst, daß eine 1% Lösung entsteht. Entsteht beim Erkalten eine steife Gallerte, so soll dies Agar anzeigen.
6. Koryzo-Membranindrogen.
Etym. Korizo von κορίζα = Schleim — Schleim mhd. slîm. Die Wurzel slī = glatt, schlüpfrig steht in Beziehung zu lat. lîmare = glätten.
Daß die vegetabilischen Schleime, soweit sie entwicklungsgeschichtlich genau verfolgt werden konnten, alle ohne Ausnahme zur Membran, also zu den Membraninen gehören, ist namentlich durch die Untersuchungen von FRANK, mir und meinen Schülern NADELMANN und WALLICZEK nachgewiesen worden. Ich habe daher die Bezeichnungen Schleimmembran und Membranschleim eingeführt. Die ersten, die einige Schleime als Membranverdickungen erkannten, waren NÄGELI und CRAMER (1855). Doch finden sich zwei wesentlich verschiedene Typen der Schleimmembranbildung, je nachdem entweder die sekundären Membranschichten oder die Interzellularsubstanz als Schleimmembran auftreten. Die Schleimschichten der sekundären (und tertiären) Membran werden der Regel nach schon als solche angelegt (Fig. 94, 1–5). Es findet hier also nicht, wie man früher glaubte, eine Schleimmetamorphose ursprünglich als Zellulose angelegter Schichten statt. Wie dies bei den Interzellularsubstanzschleimen ist, bleibt bei den einzelnen Fällen noch zu untersuchen. Hier scheint eine Umbildung der primär gebildeten Interzellularsubstanz in Schleim zu erfolgen — ähnlich der Pektinbildung aus Protopektin. Und daß endlich auch an an Interzellularen grenzenden Zellen eine Schleimmembran sich bilden kann, habe ich bei den Cycadeen-Schleimkanälen nachgewiesen (Fig. 94, 11 u. 12) und geht auch daraus hervor, daß die resinogene Schicht der schizogenen Harzkanäle ebenfalls als Schleimmembran aufzufassen ist. Es liegen also hier ähnliche Verhältnisse vor wie bei der Pektin- und Gummibildung (s. d.).
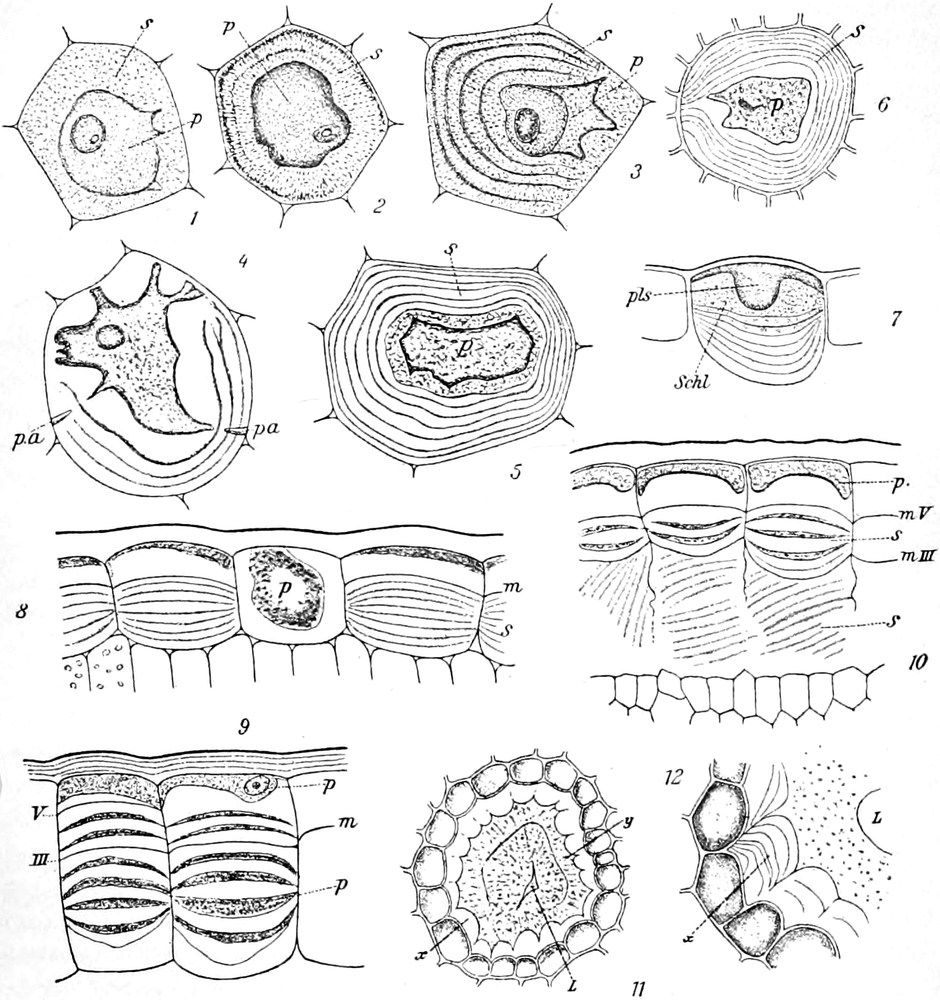
Fig. 94.
Schleimmembranen und ihre Entwickelung.
1–5 Entwicklung einer Schleimzelle aus dem Internodium von
Tilia grandifolia
. 6 Junge Schleimzelle aus der Stammrinde von
Rhamnus Frangula
. 7 Junge Epidermiszelle aus dem Blatte von
Althaea officinalis
. 8 Schleimzellen aus der Epidermis von
Cassia angustifolia
. 9 und 10 Schleimepidermis der Blätter von
Barosma vulgaris
, zwischen die Schleimschichten sind Zelluloselamellen (m) eingeschoben (1–10 nach
Walliczek
). 11 und 12 Schleimmembranen in schizogenen Kanälen von
Cycas
(
Tschirch
).
Fast alle untersuchten Schleime geben bei der Hydrolyse Arabinose und Galaktose (verhalten sich also wie Hemizellulosen und ähnlich wie Pektin, s. d.), einige (Linum, HILGER) auch Dextrose und Xylose. Arabinose und Xylose sind Pentosen:
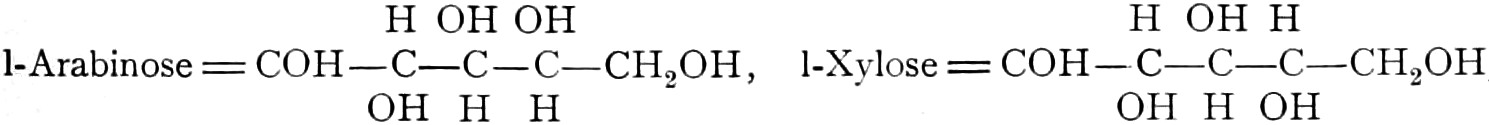
Dextrose und Galaktose dagegen Hexosen (vgl. S. 6). Alle untersuchten echten Schleime geben bei der Oxydation mit Salpetersäure Schleimsäure (zuerst von VAUQUELIN 1811 beim Leinsamenschleim beobachtet), ein weiterer Beweis, daß Galaktosegruppen darin enthalten sind (s. oben S. 226).
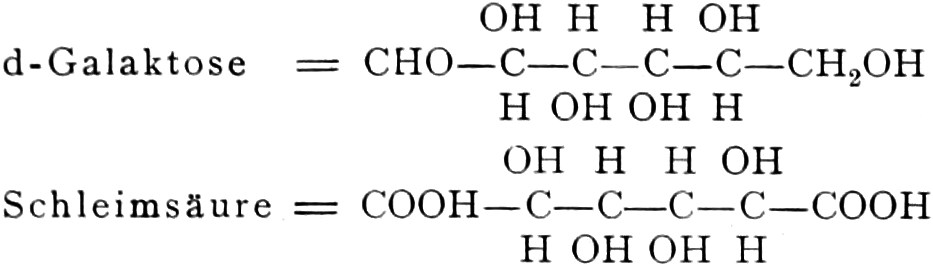
Man hat daher wohl auch zwischen Schleimsäure bildenden und keine Schleimsäure bildenden Schleimen unterschieden. Doch will ich diesen Unterschied hier nicht zur Einteilung verwerten. Ebensowenig die Reaktion mit Jodschwefelsäure oder Chlorzinkjod. Einige Schleimmembranen (Epidermis der Cydoniasamen, Salviafrüchte, Viscum) färben sich nämlich mit diesem Reagens blau (Zelluloseschleime, TSCHIRCH), andere (Echte Schleime, TSCHIRCH) gelb (Endosperm von Trigonella, Schleimzellen von Rad. althaeae). Im Zusammenhang mit dieser Erscheinung steht die Beobachtung von TOLLENS, daß einige Schleime (Agar, Linum, Cydonia, Salep, Psyllium) bei der Hydrolyse eine Abscheidung von Zellulose zeigen. Der «Zellulosegehalt» wird bei Meeresalgen auf 3,10% (Gracilaria confervoides), 4,40% (Fucus vesiculosus) und 8,89 (Vaucheria Pilus) angegeben (SESTINI, BOMBOLETTI und DELLA TORRE).
MANGIN unterscheidet, gestützt auf das verschiedene Tinktionsvermögen gegenüber den «Pektin färbenden» (vgl. oben S. 277) Lösungen (Methylenblau, Rutheniumrot): Zelluloseschleim, Pektinschleim, Kalloseschleim und gemischte Schleime. Wie schon die letzte Gruppe zeigt, gibt es hier mancherlei Übergänge. Eher läßt sich das morphologische Moment benutzen (s. unten). Ich habe schon in der Angewandten Anatomie die Schleimepidermen der Samen den endogenen Schleimzellen und den Schleimendospermen gegenübergestellt. Ihre Funktion ist sehr verschieden. Die Schleime der Schleimendosperme der Samen (Trigonella) sowie die Schleimzellen unterirdischer Reservestoffbehälter (Orchis) besitzen den Charakter von Reservestoffen. Die Schleimepidermen der Samen (z. B. Linum, Cydonia) dienen verschiedenen Zwecken: Festhalten von Wasser, Befestigung der Samen am Boden zur Sicherung der Keimung usw. (TSCHIRCH und LÜDTKE). Die Schleimepidermen der Blätter (Bukku) sind als Wasserspeicher aufzufassen. Welche Funktion die endogenen Schleimzellen der Vegetationsorgane, der Samenschalen (Cacao), der Kelch-, Blüten-, Staub- und Fruchtblätter der Sterculiaceen, Malvaceen und Tiliaceen besitzen, wissen wir nicht. Daß auch die resinogene Schicht der Sekretbehälter zu den Membraninen gehört, zeigt nicht nur der anatomische Befund, sondern auch die Untersuchung des Gummis der Gummiharze, welches ja der resinogenen Schicht entstammt (TSCHIRCH). Sie liefern bei der Hydrolyse Galaktose, Glukose und Arabinose, das Gummi der Myrrhe Galaktose und Arabinose, sowie etwas Xylose, es enthält also Galakto-Arabino-Xylane.
Nur wenig untersucht ist der sog. Inhaltsschleim. Dieser wird hier gar nicht berücksichtigt. Echte Schleime als Bestandteile des Zellinhaltes sind jedenfalls selten und immer wenn entwicklungsgeschichtliche Untersuchungen ihnen näher traten entpuppten auch sie sich als Membranschleime. So wurden die lange (LAUTERBACH) als Inhaltsschleime betrachteten Cacteenschleime ebenfalls als Membranschleime erkannt (WALLICZEK) und das gleiche gilt von dem Schleime von Viscum (CZAPEK). Nur bei Orchis ist mir die Sache auch heute noch zweifelhaft.
Mit Wasser bilden die Schleime kolloidale Lösungen. Einige (Althaea, Linum, Cydonia) lassen sich mit Ammonsulfat aussalzen (POHL).
Offenbar haben wir es aber bei den Koryzo-Membraninen nicht mit einer Substanz, sondern mit einer ganzen Klasse von Substanzen zu tun. Das zeigt schon das verschiedene Verhalten zu Wasser: einige quellen kaum, andere stark, noch andere lösen sich darin.
Lit. TSCHIRCH, Kapitel Schleimmembran in Angew. Anatomie 1888, S. 193. (Dort eine zusammenfassende Darstellung). Ferner Chemie u. Biologie d. pflanzl. Sekrete. Leipzig 1908. — KÜTZING, Grundzüge t. 4. — HOFMEISTER, Über die zu Gallerte aufquellenden Zellen der Samenepidermis. Ber. der Sächs. Ges. d. Wissensch. 1858. — NÄGELI u. CRAMER, Vorkommen u. Entstehen einiger Pflanzenschleime. Zürich 1855 (Arch. d. Pharm. 1857, 190) — WIGAND, Desorganisation der Pflanzenzellen. Pringsh. Jahrb. 3, 1863. — FRANK, Anatom. Bedeut. u. Entsteh. d. vegetabil. Schleime. Pringsh. Jahrb. 5 (1865). — TRÉCUL, Des mucilages chez les Malvacées, le tilleul, les Sterculiacées, les Cactées et les Orchidées indigènes. Compt. rend. 1862. — RADLKOFER, Monographie der Gattung Serjania. München 1875. — KLEBS, Organisat. d. Gallerte bei einigen Algen usw. Arb. d. bot. Inst. Tübingen II. — GUIGNARD, Observat. sur l’appareil mucifère des Laminariées Ann. sc. nat. (8) 15, 1892. — ULOTH, Pflanzenschleim und seine Entstehung. Flora 58, 809. — ABRAHAM, Bau u. Entwickl. der Wandverdick. in d. Samenoberhautzellen einiger Cruciferen. Pringsh. Jahrb. 16. — FLÜCKIGER (Buccu). Schweiz. Wochenschr. f. Pharm. 1873. — MARKTANNER-TURNERETSCHER, Z. Kenntn. d. anatom. Baues unserer Loranthaceen. Sitzungsb. d. Wien. Akad. 1885. — VAN TIEGHEM, Sur les canaux à gomme des Sterculiacées. Bull. soc. bot. de France 1885. — HARTWICH, Schleimzellen d. Althaea. Pharm. Zentralh. 1891, 586 und (Orchis). Arch. Pharm. 1890. — A. MEYER (Orchis). Arch. Pharm. 1886, 325. — LAUTERBACH, Bau u. Entwickl. d. Sekretbeh. bei d. Cacteen. Bot. Zentralbl. 1889. — DE BARY, Anatomie. — RADLKOFER, Monogr. v. Serjania 1875. — MANGIN, Bull. soc. bot. 1894. — TSCHIRCH, Harze und Harzbehälter. Botanischer Teil. — H. WALLICZEK, Studien über die Membranschleime vegetativer Organe. Pringsh. Jahrb. 25 (1893), 227 (auch Diss. Bern 1893). Dort weitere Literatur. — NADELMANN, Über Schleimendosperme der Leguminosen. Pringsh. Jahrb. 21, 1890 (auch Diss. 1890). — POPOVICI, Strukt. u. Entw. eigenart. Wandverd. Diss. Bonn 1893. — CZAPEK Biochemie und in GJOKIC, Sitzber. d. Wien. Akad. 105, I (1896), 451 (Viscum). — HOEHNEL, Ebenda 1881.
Chem. Untersuch.: VAUQUELIN, Ann. de chim. 80 (1811), 314. — TOLLENS, Handb. d. Kohlenhydrate. — CZAPEK, Biochemie. — CULLINAN, Bot. Jahresber. 1884, I. 71. — GANS und TOLLENS, Lieb. Ann. 249 (1889), 245. — POHL, Zeitschr. phys. Chemie 14 (1890), 151. — BAUER, Landw. Versuchsstat. 40 (1892) 480. — YOSHIMURA, Agric. Coll. Tokio 1895. — HILGER, Ber. d. d. chem. Ges. 36 (1903) 3198. — HARLAY, Journ. pharm. chim. 1902. — SESTINI, Zentralbl. Agric. Chem. 1878. — FRISCHMUTH, Chem. Zeit. 21, R. 289. — VALENTA, Klebe- und Verdickungsmittel. 1884. — Weitere Lit. bei den einzelnen Abschnitten.
HÉRAIL benutzt, MANGIN folgend, in Traité de pharmacologie 1901, die Färbbarkeit der Schleimsubstanzen durch organische Farbstoffe zur Einteilung und teilt sie in mucilages simples, m. mixtes und m. indéterminés und die m. simples wieder in mucilages cellulosiques (färbbar durch Orseilline BB und Naphtholschwarz in saurem Bade und Congorot und Benzopurpurin in alkalischem Bade — nie durch sog. basische Farben), mucilages pectosiques (färbbar durch basische Farben in neutralem Bade, z. B. Bismarckbraun, Methylenblau, Bleu de Nil und Rutheniumrot) und mucilages callosiques (färbbar durch Anilinblau in essigsaurem Bade und durch Corallin-Soda). Da alle uns interessierenden Schleime, mit Ausnahme des Salep, in die zweite Abteilung (m. pectosiques) gehören, hat diese Einteilung für uns keinen Wert. Ich führe die weitere Einteilung auf morphologischer Grundlage durch.
Die erste Gruppe der Koryzo-Membranindrogen bilden die, bei denen der Schleim von der Interzellularsubstanz gebildet wird. Hierzu gehören alle Kryptogamen-Schleimdrogen. Die zweite Gruppe umfaßt die, bei denen der Schleim von den sekundären Membranverdickungsschichten gebildet wird. Bei ihnen finden wir entweder Schleimepidermen oder Schleimendosperme oder Schleimzellen im Innern der Organe.
1. Schleime der Interzellularsubstanz.
Cryptogame Schleimdrogen
Carrageen.
Syn. Caragaheen, Carragheen, Karragaheen, Lichen Caragaheen, Fucus crispus s. hibernicus — Irländisches oder Perlmoos, Seeperlenmoos, Krauser Knorpeltang, Knorpelmoos, Krausmoos, Gallertmoos, Seemoos, Felsenmoos — mousse d’Irlande, goémon, mousse perlée (franz.) — irish Moss, pearl moss (engl.). — fuco carageo (ital.). — jersch mos (holl.) — karagén (ung.) — λειχὴν ὁ ἰρλανδικός (n. griech.).
Etym. Carrageen ist der in der irländischen Volkssprache aus Corigeen oder Carraigeen (= Felsenmoos) entstandene Name der Alge. Daß Corigeen aus κορίζα (= Schleim) und γίγνομαι (= entstehen) entstanden sei (wie WITTSTEIN meint), ist sehr fraglich. Carraigeen ist wohl ein keltisches Wort (Stamm: car = Fels). Nach Aussage eines Irländers ist die richtigste Schreibweise: Carraigeen (HANBURY), Carraig (irisch = Fels, daher Felsenmoos). Mos, mossa (mosi, mus) ist der skandinavische Ausdruck für alle laubigen Cryptogamen (nicht nur für die Moose).
Stammpflanze: Chondrus crispus (L.) STACKHOUSE (Chondrus crispus LYNGBYE, Chondrus polymorphus LAMOUROUX, Fucus crispus L., Sphaerococcus crispus AGARDH) und
Gigartina mamillosa (GOODENOUGH ET WOODWARD) J. G. AGARDH (Sphaerococcus mammillosus AGARDH, Mastocarpus mammillosus KÜTZING). Letztere Alge tritt in der Droge meist stark zurück.
Etym. χόνδρος = Knorpel, crispus = kraus, σφαῖρα = Kugel, κόκκος = Kern, γίγαρτον = Weinbeerenkern, ρόδον = Rose, φῦκος = Tang. — χονδρός bei DIOSCURIDES ist, wie ich durch Vergleich der Abbild. im Cod. constantinopol. ersehe, ein Hordeum.
Systemat. Stellung. Euphyceae — Rodophyceae — Gigartinaceae oder Klasse: Rhodophyceae — Unterklasse: Florideae — Reihe: Gigartinales — Familie: Gigartinaceae — Gigartineae.
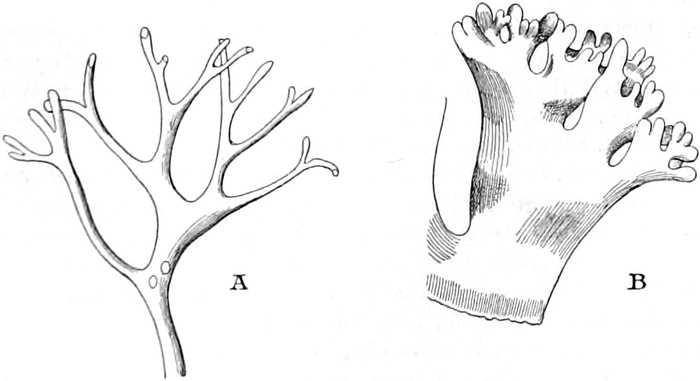
Fig. 95.
Chondrus crispus.
A. Starkgeteilter Thallus mit schmalen Lappen B. Anderes Extrem, breitblattartiger Thallus, der nur an der Spitze Teilungen zeigt.
[
Tunmann
gez.]
Beschreibung der Stammpflanzen. Chondrus (= Knorpeltang) und Gigartina (= Kerntang) sind etwa 7–15 cm hohe, rote Meeresalgen, deren Farbe von rein rosenrot über purpurrot, rotviolett zu blauviolett variiert, und deren laubiger, einer Haftscheibe aufsitzender Thallus (Lagerstämmchen) einen ganz außerordentlichen Polymorphismus zeigt (Fig. 95). Bald ist er nur wenig geteilt, bald in zahlreiche Lappen zerschlitzt, bald sind die Abschnitte breit, bald schmal, bald sehr schmal, bald reicht die Zerschlitzung bis zur Basis, bald findet sie sich nur an der Spitze breiter Lappen. Diese Variabilität war der Grund, weshalb man früher zahlreiche (über 40) Varietäten unterschied. [TURNER z. B. unterschied 9 Spielarten: virens, stellata, aequalis, filiformis, patens, lacera, samiensis, geniculata und plana.] Die Verzweigung, die stets rein dichotom ist, ist oft so groß, daß das Ganze ein krauses Durcheinander bildet. Der Thallus zeigt sehr deutliche Fadenstruktur.
Die Fortpflanzungskörper sind zweierlei Art: ungeschlechtlich entstehende Tetrasporen und durch einen Geschlechtsakt gebildete Cystocarpien. Die Tetrasporen sind paarweise geteilt und bilden Gruppen (Sori). Das weibliche Organ, das Procarp, besteht aus 4 Zellen. Die kleinste und innerste Zelle desselben, das Carpogon, bildet einen fadenförmigen, über die Lageroberfläche heraustretenden Fortsatz, die Trichogyne (Fig. 96 A tr). An diese legt sich zur Zeit der Fortpflanzung eines der in krugförmigen, an der Thallusoberfläche zu Krusten vereinigten Antheridien gebildeten, unbeweglichen Spermatien (Spermatozoiden) an. Es erfolgt Kopulation. Die befruchtete Carpogonzelle kopuliert durch einen sehr kurzen Ooblastemfortsatz mit einer zweiten Zelle des Procarps, der Auxilarzelle. Diese sendet nunmehr in das Thallusgewebe ein Büschel von gegliederten Fäden, den Gonimoblasten, dessen Endzellen und oberen Gliedzellen sich schließlich zu Sporen entwickeln. Diese Sporen, die den von der Thallusrinde umhüllten Fruchtkern bilden, werden entweder vom Cystocarpium durch Poren ausgestoßen und keimen alsdann im Wasser oder die Keimung erfolgt schon im Cystocarpium.
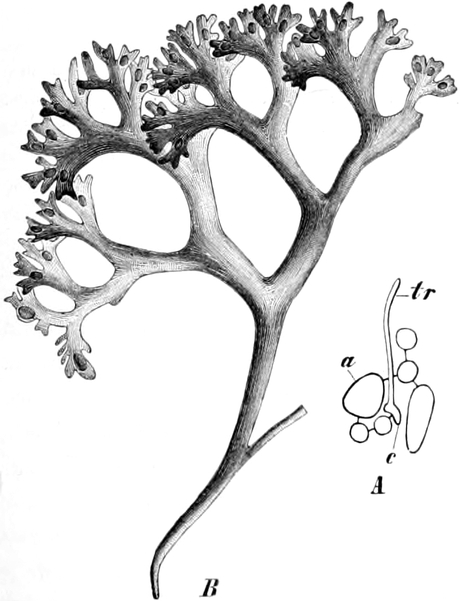
Fig. 96.
A.
Endocladia vernicata.
Dreizelliger Carpogonast einer Auxiliarzelle. c Carpogon. tr Trichogyne.
[Nach
Hauptfleisch
.]
B.
Chondrus crispus
mit Cystokarpien.
[Nach
Kützing
.]
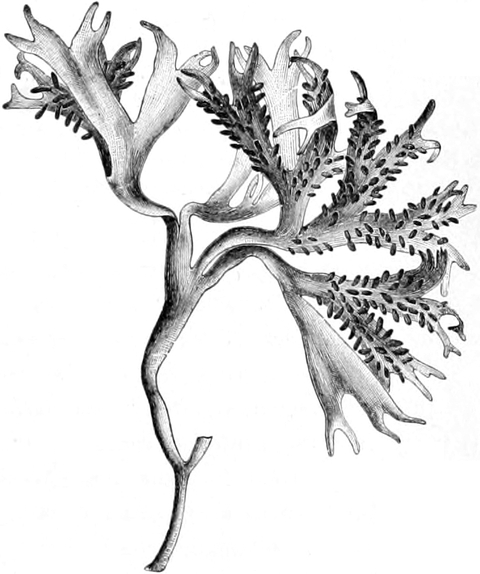
Fig. 97.
Gigartina mamillosa
mit Cystokarpien.
[Nach
Kützing
.]
Bei Gigartina STACKHOUSE (inkl. Mammillaria STACKHOUSE [Mastocarpus KÜTZING], inkl. Chondrodictyon KÜTZING, inkl. Chondroclonium KÜTZING [Chondracanthus KÜTZING], inkl. Sarcothalia KÜTZING) liegen die ebenfalls durch Poren sich öffnenden Cystocarpien in kleinen, zitzenartig über den Thallus hervortretenden Fruchtzweigchen (Fig. 99). Der Fruchtkern ist hier von einer Faserhülle umgeben.
Bei Chondrus (STACKHOUSE) J. AGARDH sind die Cystocarpien oval, meist einseitig schwach vorspringend, über die Hauptsprosse des Thallus verteilt.
Lit. Chondrus crispus STACKHOUSE apud LEMOUROUX in Ann. Mus. XX, 126. — LYNGBYE Hydr. dan. p. 15, Tab. 5, A. B. — J. G. AGARDH Florid. 246 und Alg. med. p. 104. — SCHMITZ Sitzungsber. d. Berl. Akad. 1883, 223. — SCHMITZ und HAUPTFLEISCH in Engler-Prantl Nat. Pflanzenf. I (2), 356 u. 357 (dort die übrige botanische Literatur). — BERG-SCHMIDT, Atlas S. 75 t. 162 (dort die systematische Literatur).
Abbild. MORISON, Plant. hist. univers. Oxoniae (1699), III tab. 11 (Erste Abbild. von Chondr. crisp.) — BERG-SCHMIDT, Atlas, Taf. 162. — PABST-KÖHLERS Medizinalpflanzen 80. — PLANCHON-COLLIN, Drog. simpl. p. 15. — BENTLEY-TRIMEN, Medic. plants IV, Taf. 305. — RABENHORST, Cryptogamenflora. — LYNGBYE a. a. O.
Vorkommen. Die Carrageenpflanzen sind Meeresalgen, die an den Westküsten des Atlantischen Ozeans von Norwegen (Nordkap) bis Spanien, besonders reichlich bei Irland, aber auch bei den Azoren vorkommen und an der nordamerikanischen Küste sich überall dort finden, wo die Küstenkonfiguration Westküsten erzeugt (Kap Cod Bay). Chondrus crispus fehlt im Mittelmeer und der Ostsee.
Pathologie. Auf marinen Algen sind parasitische Pilze im allgemeinen selten, doch sind solche auch auf Chondrus crispus beobachtet worden. Unter denselben ist besonders der Pyrenomycet Leptosphaeria Chondri ROSENVINGE (L. marina ROSTR. non ELL. ET EV.) zu nennen, der seine Perithecien, vermischt mit Phoma-Conidien, auf den Tetrasporangiensori und Cystocarpien bildet (s. L. ROSENVINGE in Botanisk Tidsskrift Bd. XXVII 1906 p. 33 ff.) Außerdem wird von JONES eine Sphaerella Chondri beschrieben (Ed. Fischer). Über die Überzüge von Flustra vergl. unten unter Beimengungen.
Einsammlung. Gesammelt wird das europäische Carrageen im Norden und Nordwesten Irlands, gelangt nach Sligo und von dort nach Liverpool. Ferner in neuerer Zeit in der Bretagne zwischen Plougreseant und Perros-Guirec im Tréguier. Über Port Blanc gelangt das Produkt nach Hamburg. Die französische Regierung hat 1890 Maßregeln ergriffen, dem unsinnigen Ausreißen des Knorpeltangs Einhalt zu tun. Das amerikanische, meist vortreffliche Carrageen bildet die Hauptmenge des Handels. Es besteht fast nur aus Chondrus crispus. Es wird in Plymouth (Massachusetts) bei Scituate und Cohasset an der Cape Cod Bay gesammelt. Das Geschäft betreiben dorthin eingewanderte Irländer.
Man sammelt die Alge entweder mit der Hand bei der großen Ebbe vor den Springfluten (die besten Sorten) oder mit einem eisernen Rechen bei den kleinen Ebben (die schlechteren, technischen). Dabei wird der Thallus fast immer von der Haftscheibe abgerissen. Die abgelösten Pflanzen werden dann an der Sonne gebleicht, um den roten Farbstoff zu entfernen, in mit Süßwasser gefüllten Fässern gerollt und nochmals an die Sonne gebracht (MELZAR, BATES), wohl auch mit schwefliger Säure nachgebleicht (GUÉGUEN). Durch diese Behandlung wird die schön rote schlüpfrige Alge gelblich weiß und knorpelig hart. Die Haupternte, die den Preisgang bis zum Frühjahr reguliert, beginnt Mitte September.
KRÄMER berichtete (1899) über die Einsammlung in Amerika. Die Ufer der Bucht von Scituate, die etwa 10000 Pfd. Carrageen p. a. exportiert, fallen allmählich gegen die brakige Marsch ab. Dort wird das Carrageen von Ende Mai bis September gesammelt, am meisten im Juni und Juli. Die Sammler und Sammlerinnen arbeiten oft mit den an langen Stangen befestigten schweren eisernen Rechen von 4 Uhr morgens bis 8 Uhr abends. Die Segler gehen mit der Halb-Ebbe hinaus und kommen mit der Halb-Flut zurück. Ein Sammler kann 50 Pfd. pro Tag sammeln. Das frische Carrageen wird in zwei Fuß im Durchmesser haltende hölzerne Tröge (boxes) geschüttet, dann ausgebreitet und eine Woche der Luft und Sonne ausgesetzt. Dann ist es schon hellpurpurgelb. Nun wird es in halbe «hogsheads» (Fässer von 50–70 Gallonen) getan und mit Segeltuch zugedeckt. Diese Fässer werden an klaren Tagen zu den brakigen Marschen gerollt. Sie werden dann mit Wasser gefüllt, die Leinwand wieder darüber getan und das Ganze wieder hinaufgerollt. Dann wird das Carrageen wieder ausgebreitet und unter öfterem Umwenden weiter gebleicht. Schließlich wird es in Fässern oder Ballen verpackt.
Lit. MELZAR, Proc. am. pharm. assoc. 1860, p. 165. — BATES, Gathering and curing of carag. in Massachusetts, Amer. journ. ph. 1868, p. 417, Ph. Journ. XI (1869) 298 und VIII (1878) 304. — KRÄMER, Am. journ. pharm. 1899, p. 481, Pharm. journ. 1899 Nr. 1527. — GUÉGUEN, Le carag., ses emplois pharm. et industr. et sa recolte en Bretagne. Bull. sc. pharmac. X (1904) p. 225.
Handelssorten, Handelswege, Verpackung. Der Handel unterscheidet C. naturale — depuratum — electum albissimum. Nur das letztere ist für Heilzwecke brauchbar. Der Großhandel bezeichnet: elect (1⁄1 und 3⁄4) — fein A — fein B — fein C — 0000 — 000 — 00 — ff. naturell 0 — fein nat. 1 — gut. (Grossmann) Haupteinfuhrhafen und Handelsplatz für Carrageen ist Hamburg. Carrageen kommt meist in gepreßten Ballen zu 50 und 100 kg in den Handel. Es wird im Großhandel meist als Lichen (!) Carragheen bezeichnet, von allen Bezeichnungen die unrichtigste, denn es ist doch keine Flechte, ebensowenig wie ein Moos.
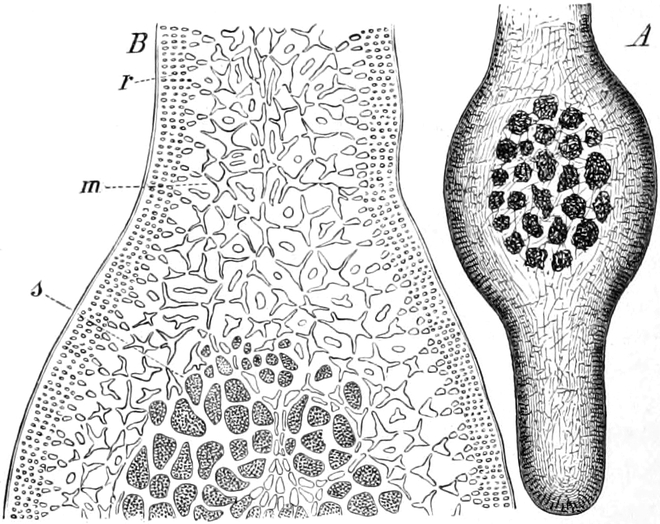
Fig. 98.
Chondrus crispus
. A. Querschnitt durch ein Cystokarpium, schwach vergrößert. B. Ein Stück stärker vergrößert. r Rindenschicht, m Markschicht, s Sporen.
[Nach
Luerssen
.]
Morphologie der Droge. Chondrus crispus besitzt einen kurzen, fast zylindrischen Stiel und einen kleinen, höchstens handgroßen, 4–15 cm hohen, fleischigen, knorpeligen (daher Chondrus, s. oben Etym.), flachen, gallertartigen, laubartigen, am Rande etwas wellig krausen, wiederholt gabelig, in breitere und schmälere Lappen dichotom zerteilten, nach oben fein zerschlitzten, an der Spitze gestutzten, ausgerandeten, bei der Droge gelblichen, hornartig durchscheinenden Thallus. Die Gestalt und die Zahl der Lappen ist sehr variabel (s. oben). Dieselben sind entweder schmal, linealisch, gespreizt mit den äußersten Ästen durcheinander geschoben, am Ende abgerundet, gestutzt oder seicht ausgerandet (so der Typus) oder sie sind stark verbreitert, bedecken einander zum Teil, sind an den Rändern wellig gekräuselt oder unregelmäßig gelappt. Der Thallus ist am Grunde mit einer kleinen, am Gestein fest haftenden Scheibe (Haftscheibe) versehen, die jedoch, da die Droge beim Einsammeln von dem Boden abgerissen wird, derselben so gut wie immer fehlt. Eine Haftscheibe trägt oft mehrere Sprosse. Der laubartigen Form des Thallus verdankt die Pflanze die Bezeichnung Moos (s. oben Etym.). Bei weitem nicht alle Exemplare der Droge enthalten Fortpflanzungsorgane. Die Cystokarpien (Sporenfrüchte) sind in Form von oval-halbkugeligen, aus der Ebene des Thallus nur wenig buckelig hervorragenden, flach warzenförmigen Erhebungen an der Thallusoberseite sichtbar (Fig. 98). Unterseits entsprechen ihnen (besonders an der trockenen Droge) oft flache Vertiefungen. Sie enthalten zahlreiche Karposporen (Fig. 98). Die Tetrasporen finden sich im Thallus zerstreut in kleine, die Thallusfläche schwach vorwölbende Häufchen vereinigt. Sie sind an der Droge sehr viel seltener zu finden als die Cystokarpien.
Der gallertig-fleischige, verschieden verzweigte Thallus von Gigartina mamillosa ist nicht flach, sondern durch Aufwärtsbiegen der Ränder rinnenförmig (nur selten ist auch hier der Thallus flach riemenförmig). Die Abschnitte sind schmäler. Die meist in großer Anzahl vorhandenen Cystokarpien sitzen in kurzen, umgekehrt eiförmig-ellipsoidischen, papillösen (daher mamillosus = zitzenförmig) und kurz gestielten Exkreszenzen der Thallusoberfläche (Fig. 99). In der Droge erscheinen diese «Fruchtzweigchen» oft etwas umgebogen und gleichen Dornen (Fig. 97). Den häutigen Haftscheiben entspringen mehrere bis 20 cm hohe Sprosse. Im Habitus ist Gigartina dem Chondrus ähnlich und wie dieser in der Zerteilung des Laubes variierend.
Die Farbe dieser Florideen ist im frischen Zustande prächtig rot und wird erst durch den Bleichprozeß (s. oben) in die charakteristische gelbliche Farbe übergeführt, doch zeigen hier und da besonders die Spitzen des Laubes und die Tetrasporenhäufchen auch in der trockenen Droge noch eine schön rote Farbe. Die Farbe der trockenen Droge ist weiß oder gelblich oder gelblich weiß.
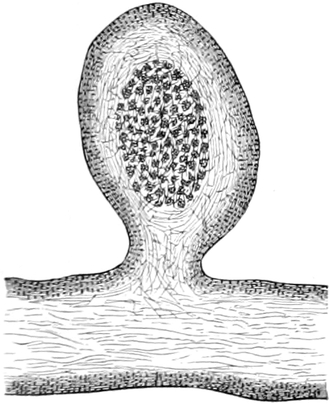
Fig. 99.
Gigartina mamillosa.
Längsschnitt durch einen Thalluslappen mit einem Cystokarpium.
[Nach
Luerssen
.]
Die trockene Droge ist fast geruchlos. Mit kaltem Wasser angequollen (wobei Carrageen seine ursprüngliche Gestalt wieder annimmt), entwickelt es den charakteristischen sogenannten Seegeruch, der Geschmack ist schleimig fade, besonders bei den schlechteren Sorten etwas salzig. Kocht man es mit dem 30fachen Gewicht Wasser, so erhält man einen beim Erkalten erstarrenden, gallertigen Schleim.
Anatomie. Der Thallus des Carrageen besteht aus zwei Schichten, der zentralen Markschicht und der beiderseits dieser aufliegenden Rindenschicht. «Von einem mittleren Strange dünner, längsverlaufender, hier und da gegabelter Markfäden (Leitungsgewebe) zweigen auswärts zahlreiche, wiederholt gegabelte Rindenfäden ab, die einwärts etwas lockerer, aber doch ziemlich dicht geordnet, auswärts dicht seitlich zusammenschließen zur Bildung einer kleinzelligen, antiklinreihigen Außenrinde» (Assimilationsgewebe). Die Vegetationsspitze zeigt eine fächerförmig strahlende Faserstruktur.
Die sich leicht von der Markschicht ablösende Rindenschicht besteht aus 4–5 Reihen außen sehr englumiger, nach innen zu allmählich weiter werdender kleiner rundlicher Zellen (Rindenfäden). Die äußerste, sehr enge Zone ist von einem in Schwefelsäure unlöslichen Häutchen das in seinem Verhalten etwas von der Cuticula der höheren Pflanzen abweicht (TUNMANN), sowie bisweilen von ausgetretenen Schleimmassen bedeckt. Die Zellen der Rindenschicht stehen bisweilen, wie Behandeln des Schnittes mit Jodschwefelsäure lehrt, durch zarte Plasmafäden in offener Kommunikation miteinander, aber nur in radialer Richtung. Bisweilen sitzen auf einer weiten Zelle an der Grenze von Rinde und Markschicht zwei, auf jeder dieser wiederum zwei Zellen und so fort, so daß baumartige Bildungen entstehen, deren Elemente untereinander kommunizieren. Der Inhalt der Rindenzellen wird durch Jodwasser und Osmiumsäure nicht verändert, Jodjodkali färbt stark gelb, Millons Reagens rötlich. Er enthält hauptsächlich die Reste der Chromatophoren neben Amylodextrin. Die Lumina der Rindenzellen sind rundlich oder oval. Je weiter nach innen zu, um so weiter werden die Zellen, um so unregelmäßiger ihr Lumen und um so reichlicher das Amylodextrin im Inhalt. In der breiten Markschicht ist das Lumen selten rundlich, meist oval, schlauchartig gestreckt. Durch schmale geschlossene Tüpfel, neben denen die Membran derber ist, stehen die Lumina benachbarter Zellen miteinander in Verbindung (Siebhyphen WILLE). Bisweilen schien es mir, als ob die dünne Tüpfelmembran mittelst sehr feiner Kanälchen durchbrochen sei, so daß also auch hier eine offene Kommunikation hergestellt sein würde. (Also Makroporen mit Mikroporen, WILLE.) Die großen Markschichtzellen (Markfäden) besitzen wie die 5–10mal kleineren Rindenzellen eine das Lumen auskleidende, nicht sehr dicke sekundäre, aus mehreren z. T. amyloidischen (TUNMANN) Lamellen bestehende Membranverdickungsschicht und eine außerordentlich breite, durchweg verschleimte Interzellularsubstanz (Kollode). Die letztere löst sich schon in kaltem Wasser leicht. Sie liefert in allererster Linie den Carrageenschleim. Die das Lumen umgebende, bisweilen, besonders in der Nähe der Tüpfel, Schichtung zeigende Innenhaut löst sich wenig oder gar nicht, sie besteht aus einer eigenartigen Cellulose, wird durch Jodschwefelsäure blau, durch Chlorzinkjod zunächst hellblau, dann dunkelblau, durch Jodjodkali, nach längerem Liegen, blau — was alles bei der verschleimten Interzellularsubstanz nicht der Fall ist, die auch auf Chlorzinkjod nicht reagiert und auch Farbstoffe wenig aufnimmt, doch färbt sie sich mit den sog. Pectinfärbemitteln: Methylenblau, Naphtylenblau und Bismarckbraun (TUNMANN). Nach WISSELINGH wird die verschleimte Interzellularsubstanz durch Glyzerin bei 300° zerstört. Rutheniumrot färbt alle Membranteile rot. Der aus zahlreichen kleinen rundlichen oder ovalen Körnchen bestehende Inhalt der Markzellen färbt sich mit Chlorzinkjod rotviolett, mit Jod violett bis rotbraun. Erwärmt man einen mit Jod gefärbten Schnitt, so verkleistern die Körnchen und in der Zelle liegt ein rotvioletter Ballen. Der Inhalt der Zellen der Markschicht verhält sich also wie Amylodextrinstärke (vergl. oben S. 199). Ich habe sie denn auch bereits 1888 als solche bezeichnet. Gewöhnlich wird sie Florideenstärke genannt. Werden dünne Schnitte im geschlossenen Rohr einen Tag lang mit alkoholischer Kalilauge erwärmt und nach dem Abwaschen einige Stunden in Jodjodkali gelegt, so färbt sich der Inhalt der Zellen, nicht die Wand, blau (FLÜCKIGER). Die Markschicht macht die Hauptmasse der Droge aus. Ihre Zellen sind in Größe und Form sehr unregelmäßig. In der Nähe des Fruchtkerns der Cystokarpien, die man ziemlich häufig an der Droge antrifft, sind sie kurz. Der Fruchtkern (s. oben) des Cystokarpiums bildet bei der Droge meist ein unregelmäßiges Flechtwerk geschrumpfter Stränge, dessen Lücken zahlreiche, zusammengehäufte, an Amylodextrin reiche Sporen eingelagert sind. Dieser dem Thallus eingesenkte Fruchtkern ist bei Chondrus nicht von einer besonderen Faserhülle umgeben. Die Sporen der Cystokarpien sind rundlich, oval, birnförmig oder unregelmäßig und bilden Häufchen, die oft zu mehreren vereinigt in der Markschicht liegen und eine oft beiderseitige flache Hervorwölbung der Rindenschicht erzeugen, so daß die Cystokarpien durch runde Warzen auf der Thallusoberfläche sich bemerkbar machen. Die Sporen bilden die Endglieder kurzer, oft mehrmals gabelig verzweigter Zellreihen. Bei Gigartina liegen die Cystokarpien in dornartigen Ausstülpungen des Thallus (s. oben).
Um die anatomischen Verhältnisse zu studieren, präpariert man am besten in Alkohol und läßt allmählich verdünntes Glyzerin zufließen. Durch Wasser quillt der trockene Querschnitt auf die doppelte Breite.
Lit. VOGL, Komment. z. österr. Pharmak. VIII. 1908. — TSCHIRCH, Angew. Anat. S. 100. — BERG, Anat. Atl. t. II. — SCHMITZ-HAUPTFLEISCH in Engler-Prantl, Pflanzenfam. I, 2. — Für die Florideenstärke: NÄGELI, Stärkekörner, S. 533. — VAN TIEGHEM, Compt. rend. 61, p. 804. — SCHMITZ, Chromatophoren, S. 151. — SCHIMPER, Pringsh. Jahrb. XVI, S. 199. — N. WILLE, Bidrag til algernes physiologiske anatomi. Svensk. Vetensk. Akad. Handling. 1885. — HANSEN, Mitth. zool. Stat. Neapel XI. — BRUNS, Flora 1894, Ergänzb. S. 173. — KOLKWITZ, Ber. d. Bot. Ges. XVII, S. 247, Zeitschr. wiss. Mikrosk. XVII, S. 263. — TUNMANN: Anatomie und Inhaltsstoffe von Chondrus crisp. Apoth. Zeit. 1909, Nr. 17. — Erste Abbild.: OUDEMANS Atlas 1854.
Chemie. Carrageen enthält meist c. 1% Stickstoff (= 6,3% Proteïnsubstanzen), bisweilen auch mehr (bis 9,4% Proteïnsubstanzen, CHURCH). Andere Meeresalgen enthalten 1–1,8% N (MARCHAND). Mit zwanzig Teilen Wasser gekocht liefert Carrageen beim Erkalten eine Gallerte, die durch Jod nicht blau wird (Unterschied von Isländischmoosgallerte) und sich nicht in Cuoxam. löst. Carrageenschleim wird durch Ammoniumsulfat, Ammonphosphat und Kaliumacetat gefällt (POHL). Mit 50 Teilen Wasser gekocht erhält man eine Lösung, aus der Alkohol den Schleim (Carrageenin PEREIRA, Caragin BERZELIUS, Goëmin BLONDEAU — Goëmon ist der nordfranzösische Name der Alge — Gelin) in Fäden fällt, die hornartig eintrocknen, c. 0,8% Stickstoff und bis 16% Mineralsubstanzen enthalten, sich nicht in Kupferoxydammon lösen und durch metallisches Jod sich rötlich färben. Dieser Schleim liefert mit schwacher Salpetersäure Weinsäure, Oxalsäure und Zuckersäure, mit starker 14 bis 23% Schleimsäure (FLÜCKIGER, OBERMEIER, SEBOR). Er gleicht dem Pararabin REICHARDTS. Durch Kochen mit Schwefelsäure entsteht neben Ameisensäure Lävulinsäure (BENTE). SCHMIDT erhielt bereits 1844 hierbei auch Zucker. Bei der Hydrolyse lieferte Carrageen Mannit, Hydroxylmethylfurfurol und d-Galaktose, sowie auch Fruktose und Glukose. Carrageen enthält also außer Methylpentosen- und Glukosegruppen ein Galaktan, Fruktosan und wenig Pentosan (MUTHER und TOLLENS). SEBOR erhielt bei der Hydrolyse ebenfalls Galaktose, dann d-Glukose, Fruktose und Arabinose. Die gefundene Menge Schleimsäure (23,4%) entspricht 29,6% Galaktose (TOLLENS berechnet 20–28%), die mit Salzsäure erhaltene Menge Furfurol (1,2%) entspricht 2,5% Pentosen. SEBOR hält den Schleim für eine sehr komplizierte, wohl aus Galaktan, Glukosan und Fruktosan bestehende Kohlenhydratkombination von hohem Molekulargewicht, in dem auch ein d-Galakto-Xylan steckt. Der Stickstoff, den schon BLONDEAU im Schleime fand — er fand 2% (FLÜCKIGER und OBERMEIER 1%) neben 2,5% Schwefel — und der sehr schwer aus ihm zu entfernen ist, ist natürlich auf eine Verunreinigung mit Eiweißsubstanzen zurückzuführen. Der reine Schleim entspricht der Formel C6H10O5 (C. SCHMIDT). GIRAUD fand nur Spuren N darin. Auch die Mineralsubstanzen sind schwer aus dem Schleim zu entfernen. Selbst nach 20–30 maligem Fällen sind noch beträchtliche Mengen darin (MORIN). Die Menge des Schleimes beträgt c. 80% (nach CHURCH 55,5%, HERBERGER 79,1%). Er ist ausschließlich Membranschleim (Kollode). Zucker fehlt im Carrageen (GUIBOURT).
Durch Destillation des Carrageen mit Schwefelsäure und Wasser erhält man im Destillat Fukusol, ein Gemenge von Furfurol und Methylfurfurol (s. bei Laminaria). C. enthält etwas Fett, aber keine Stärke, wohl aber einen mit Jod rotbraun sich färbenden Inhaltskörper der Zellen, der mit dem Amylodextrin verwandt oder damit identisch ist (s. oben).
C. enthält etwas Jod (STEINBERG (1842), SARPATI, GROSSE, EBERS), das sich schon in der Asche von 10 g leicht nachweisen läßt (FLÜCKIGER, VAN ITALLIE, vergl. auch unter Laminaria), und Brom (DUPASQUIER 1843, GROSSE) in Form von Jodiden und Bromiden des Na, Ca und Mg, aber wohl auch (oder nur?) organisch gebunden. TUNMANN gelang es in 0,5–1,0 Carrageen Jod auf mikrochemischem Wege nachzuweisen. Die Asche beträgt 9,5–18% (14,15% CHURCH, 15,9% JOLLES). Sie ist reich an Sulfaten, z. B. Natrium- und Calciumsulfat und Chloriden. CZAPEK gibt 20,61% Reinasche an und darin 17,32% K, 18,73 Na, 7,16 Ca, 11,35 Mg, 2,21 Phosphorsäure, 41,24 SO3, 3,79 Cl. Nach meinen Erfahrungen, die mit denen von CAESAR und LORETZ und HAUKE übereinstimmen, kann man 18% Asche (als Maximum) verlangen. HAUKE fand 15,32 bis 17,7%. CHURCH fand, daß käufliches Carrageen mehr Schwefel enthält als dessen Asche.
Der Farbstoff ist in der Droge meist vollständig oder nahezu vollständig durch Bleichen zerstört. Er ist in Chromatophoren enthalten und ein Mischfarbstoff. Dieser Mischfarbstoff, den COHN (1867) Rhodophyll nannte, besteht aus einem roten Farbstoff, der von KÜTZING (1843) als Phycoërythrin bezeichnet wurde, und der schon beim Übertragen der Pflanze in Süßwasser in dieses diffundiert, einem gelben, dem Carotin ähnlichen Farbstoff (HANSEN) und Chlorophyll. Das Phycoërythrin hat im Spektrum 4 Bänder: 590–620, 550 bis 570, 520–540, 485 bis 585 (SCHÜTT). Das Phycoërythrin, das MOLISCH in hexagonalen Kristallen erhielt, scheint ein gefärbtes Protein oder eine Eiweißverbindung ähnlich dem Hämoglobin zu sein.
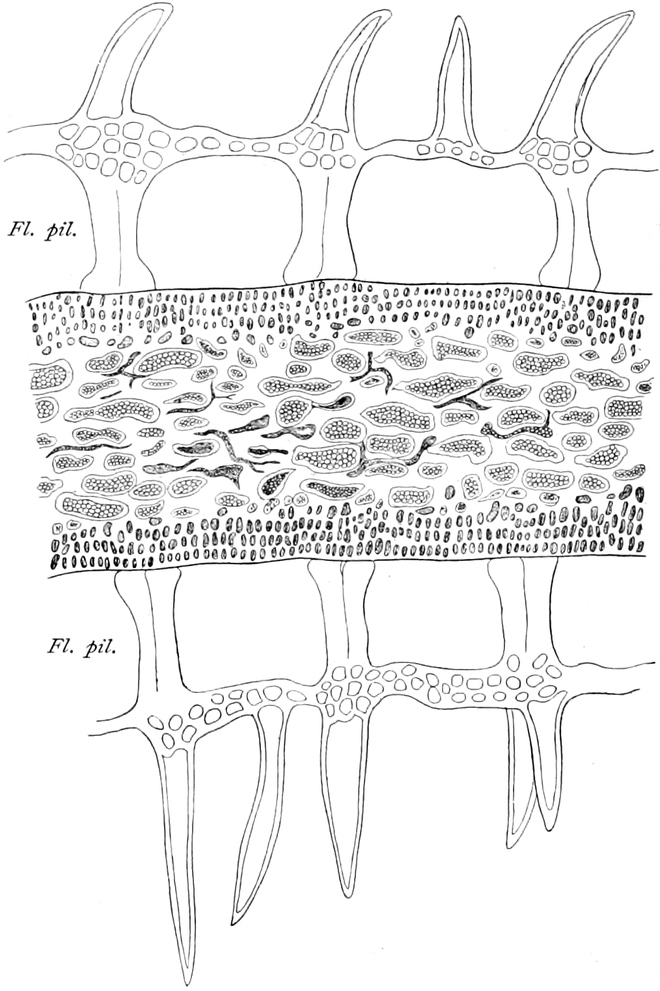
Fig. 100.
Thallus von
Chondrus crispus
mit
Flustra pilosa
(
Fl. pil.
) besetzt.
[
Tunmann
gez.]
Lit. Die ersten Analysen sind von HERBERGER (BUCHNER’S Rep. 49, 134 auch in WIGGERS Pharmakognosie 1840 und in PEREIRA Heilmittellehre) und FEUCHTWANGEN (Amer. journ. of sc. and arts XXVI). — DIERBACH, Die neust. Entdeck. 1837 und Mat. med. 1841. — BLONDEAU, Journ. ph. 1865, II, 159. — ROCHLEDER, Chem. u. Phys. d. Pflanz. — C. SCHMIDT, Ph. Jahresb. 1844. LIEB. Ann 51, S. 29. — STEINBERG, Journ. p. Chem. 25, 379. — DUPASQUIER, Journ. pharm. chim. méd. 1843, 113. — GROSSE, Pharm. Zentralbl. 1839, S. 125. — CHURCH, Journ. of Botany 1876 und Proc. Amer. pharm. assoc. 25, (1877), 177. — MARCHAND, Ann. chim. phys. VIII (1866), p. 320. — GIRAUD, Etude compar. des gommes et mucilag. Thèse Paris 1875. — GUIBOURT, Journ. chim. méd. VIII, 663. — TOLLENS, Kohlenhydrate. — BENTE, Ber. chem. Ges. 8, 417, 9, (1876), 1158. — PEREIRA, Heilmittellehre. — SEBOR, Österr. Chem. Zeit. 3 (1900), 441 und Zeitschr. f. Zuckerindustrie in Böhmen 25, 94. — HÄDECKE, Über die aus C. entstehenden Zuckerarten, Diss. Göttingen 1887. — HÄDECKE, BAUER und TOLLENS, LIEB. Ann. 238, (1887), 302. HÄDECKE, Diss. Göttingen. — MUTHER und TOLLENS, Ber. d. chem. Ges. 1904, 298. — HANSEN, Journ. pharm. 1896, 3, p. 462, Ann. agronom. 1896. — WHEELER and STANFORD, Pharm. Journ. XII, p. 642. — STANFORD, ibid. XII, p. 1019 u. XIV, p. 1009. — FLÜCKIGER, Pharmakogn. 3. Aufl. — FLÜCKIGER und OBERMAIER, Schweiz. Wochenschr. 1868, 85. — TSCHIRCH, Artikel Carrageen in Realenzyklopädie. — Rhodophyll siehe CZAPEK, Biochemie I, und MOLISCH, Bot. Zeit. 52 (1894) 177. — Mikrochem. Jodnachweis: TUNMANN Pharm. Centralh. 1907, 506. VAN ITALLIE, Arch. Ph. 1889, 1132. Ned. Tijdschr. 1889. Pharm. Zentralh. 1901.
Geruch und Geschmack. Der Geruch der Droge ist tangartig, der Geschmack fade-schleimig, schwach salzig.
Beimengungen. In gutem Carrageen findet man fremde Algen nur in sehr geringer Menge, da die Droge von diesen, sowie von Schnecken, Korallen, Muscheln und Steinchen durch Auslesen befreit wird. Einige Exemplare der Droge zeigen weiße oder grauweiße Überzüge von Flustra pilosa (Fig. 100), einer kleinen Bryozoë oder weißliche körnige Calciumkarbonatreste einer Blätterkoralle. «Reichlich mit Polypen besetztes C. ist zu verwerfen» (Pharm. helvet. IV.) In schlechter Droge finden sich bisweilen: Ceramium rubrum AG., Fucus canaliculatus, Furcellaria fastigiata LAM. (Fucus fastigiatus HUDS.), Laurencia pinnatifida LAM., Chondria obtusa, Polysiphoniaarten, Hypnea confervoides, Stilophora rhizodes, Sphorochnus rhyodes, Haleseris polypodioïdes, Porphyria laminata, sowie (was ich für zulässig halte): Chondrus canaliculatus GREV., Gigartina acicularis LAMOUR. (mit zylindrischem gabelteiligem Thallus, ist bis zu 40% im französischen Carrageen gefunden worden) und Gigartina pistillata LAMOUR., sowie andere Chondrus- und Gigartinaarten.
Prüfung. Die Prüfung erstreckt sich, da die Droge nur in toto verwendet wird, auf eine Durchmusterung. Bei zweifelhaften Stücken empfiehlt sich Aufweichen in Wasser. Die 1=30 bereitete Gallerte darf durch Jod nicht blau werden.
Mit schwefliger Säure gebleichtes Carrageen — solches ist im Handel — sollte nicht medizinisch verwendet werden. Man prüft darauf in folgender Weise: Wird C. mit 20 Teilen Wasser übergossen und eine Viertelstunde lang mazeriert, so darf die davon abfiltrierte Flüssigkeit blaues Lackmuspapier nicht röten. 20 ccm des Filtrates sollen durch einen Tropfen n/10 Jod gelb gefärbt werden.
Anwendung. Das C. gehört zu den Schleimdrogen, also neben Althaea, Linum, Traganth und Salep. Es rangiert zudem unter die schleimigen Vehikel. Die Ärzte brachten und bringen dem Carrageen wenig Interesse entgegen. Man verwendet es als Nährmittel bei Phthisikern (seit 1831), bei Katarrhen (STOLLWERKS Brustbonbons, Gelatina Carrageen, Pasta cacao carragenata, Saccharolatum carragenat.) und zur Herstellung haltbarer Leberthranemulsionen, dann zum Cataplasma artificiale von LELIÈVRE (Ersatz der unsauberen Leinsamenbreiumschläge). Nur in Irland scheint es seit langem als Heilmittel (bei Schwindsucht, Skrofeln, KOLB) und als geringwertiges Nahrungsmittel, z. B. zum Mästen von Kühen und Kälbern, benutzt worden zu sein. Die größte Menge, besonders des amerikanischen Carrageens, wird technisch verwendet und bildet ein wichtiges Ersatzmittel des Gummis in der Zeugdruckerei, der Appretur, der Papierfabrikation, der Textilindustrie (LABOULAYE) und wird auch bei Herstellung der Stroh- und Filzhüte, sowie zum Klären (Schönen) von Bier und Honig benutzt. In der Kosmetik bedient man sich seiner zum Befestigen der Haare (Bandoline). Neuerdings benutzt man es auch zur Herstellung von Nährböden für bakteriologische Zwecke (MIQUEL). Das Kesselsteinmittel Végétaline naturelle enthält auch Carrageen.
Lit. S. BROWN, On the mucilage of the fungi with remarks on its application to economical ends. New. Edinb. philos. journ. 26 (1839) p. 409. — MÉRAT, Dict. scienc. medic. 1816. Fucus und Suppl. 1846. — TSCHIRCH, in Realenzykl. 2. Aufl. — LABOULAYE, Dict. d. arts et manufact. 1907 Lichen. WOLFFSHEIM, Journ. prakt. Heilk. 1836. — MEYER, De fuco crispo, Dissert. Berlin 1835. — MOUCHON, Journ. de méd. de Lyon 1844. — HAGER, Manuale. — PEREIRA, Heilmittellehre.
Geschichte. Carrageen ist noch nicht lange in Anwendung, in England seit 1831 (durch TODHUNTER in Dublin empfohlen), etwas später in Deutschland (durch GRÄFE aus England gebracht und durch JOBST empfohlen 1837), in Frankreich seit 1846 (empfohlen durch GUIBOURT 1832, BÉRAL 1835). Die Anwendung zur Herstellung von Cataplasmen empfahl LELIÈVRE 1875 (GUÉGUEN). Die Anwendung in der Industrie ist noch jüngeren Datums. Sie kam eigentlich erst auf, als infolge der Sudanaufstände das Gummi knapp zu werden anfing. Nur in Irland dürfte es als Heilmittel schon seit langem im Gebrauch sein (FLÜCKIGER).
Lit. TODHUNTER, Monthl. gaz. of health, Jan. 1831. — PEREIRA, Elem. of mat. med. II (1845) part. I. 9. — DIERBACH, Die neuest. Entd. d. Mat. med. I (1837) 50, II S. 271. — FLÜCKIGER, Pharmak. 3. Aufl. und Pharmakographia. — GUIBOURT, Sur le Carragaheen, Journ. chim. méd. VIII, 1832. — BÉRAL, Ebenda, XI, 1835 u. Bull. gén. de thérap. VIII, 1835.
Paralleldrogen. Als solche können alle Florideen aus der Verwandtschaft von Chondrus und Gigartina betrachtet werden, besonders Gigartina acicularis (s. oben unter Beimengungen), denn alle diese liefern, wenn sie zuvor gebleicht werden, einen farblosen Schleim ähnlicher Eigenschaften. Als Carrageenersatz werden speziell genannt: Gelidium cartilagineum GAILL., Gracilaria compressa GREV., Cyclocladia articulata GREV. und Gloiopeltisarten. Dazu gehören auch die Agar-Agar liefernden Algen (s. d. und DRAGENDORFF, Heilpflanzen).
Stipites Laminariae.
Syn. Alga digitata, Riementang — Laminaire digitée (franz.).
Stammpflanze. Laminaria Clustoni (EDMONSTON) LE JOLIS als besondere Art oder als Varietät von L. digitata (L.) LAMX. (Fucus digitatus L., Hafgygia digitata Ktz.): Laminaria digitata (L.) LAMOUROUX β Clustoni EDMONSTON (— auch Cloustoni oder Cloustonii — geschrieben). Die älteste Bezeichnung (1772), die vielleicht die Priorität verlangt, ist: Laminaria hyperborea GUNNERUS.
COHN zeigte, daß unter Laminaria digitata zwei Arten gehen: L. flexicaulis LE JOLIS und L. Clustoni EDMONSTON, daß aber nur die zweite Stäbchen liefern kann, da der Stipes der erstgenannten zu dünn ist.
Systemat. Stellung. Phaeophyceae (Fucoideae) — Phaeosporeae — Laminariaceae.
Beschreibung der Stammpflanze. Die Laminarien sind große, braune Meeresalgen, deren Thallus in ein vielfach gegabeltes, an den Enden mit Haftscheiben versehenes wurzelartiges Haftorgan — das ursprüngliche Haustorium wird durch sog. Hapteren verdrängt —, einen langen Stil (Stipes) und einen blattartig (daher Laminaria von Lamina = Blatt) ausgebildeten oberen Teil (Laubteil) gegliedert ist. Sie wachsen interkalar, mit lokalisiertem, zwischen Stengel und Blatt liegendem, interkalarem Vegetationspunkt. Das Haftorgan und der Stipes perennieren, das Blatt wird alljährlich regelmäßig erneuert, das alte abgestoßen (Fig. 101). Bei der L. Clustoni tritt die eigentümliche Blattform sehr früh auf. Die einfächerigen Sporangien sind in großen Sporangienständen (Sori) vereinigt, die auf dem Blattkörper zerstreute Flecke bilden (Fig. 101).
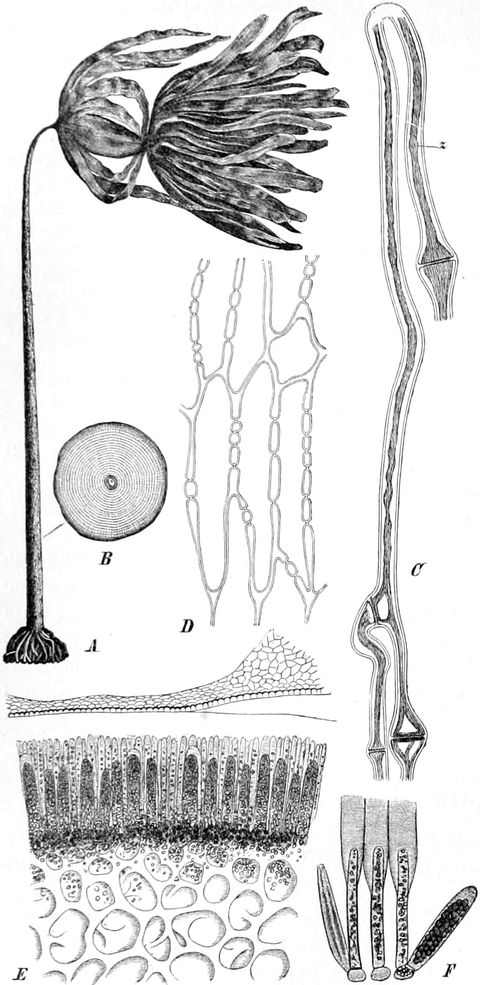
Fig. 101.
A-C
Laminaria Clustoni
.
A Habitusbild eines im Blattwechsel begriffenen Exemplars. B Querschnitt durch den Stipes 2 cm oberhalb des Haftorgans. C Siebhyphen des Stammes. D Längsansicht kürzerer Zellen: die Interzellularsubstanz verschleimt.
E-F
Lamin. saccharina
.
[E Querschnitt durch einen fertilen Blatteil. F Drei Sporangienstände mit einem entleerten und einem vollen Sporangium.
AB nach
Foslie
, C nach Wille, D nach
Luerssen
, EF nach
Thuret
.]
Laminaria Clustoni — FLÜCKIGER will sie als besondere Art, L. hyperborea GUNN., betrachtet wissen — geht weit in die See ins Tiefwasser hinaus. Sie hat oft recht beträchtlich lange, starre, aufrechte, runde, an der Basis sehr verdickte, gegen die Spitze allmählich verdünnte, hellbraune Stipites, die plötzlich in den recht ansehnlichen, bis 70 cm langen, hellbraunen, handförmig (daher digitata) in breite Lappen geteilten, lederigen, kastanienbraunen Laubteil übergehen. Der alte Laubteil wird alljährlich oben abgestoßen, nachdem von unten her ein neuer gebildet worden ist. Man findet die Laminarienstipites nach einer stürmischen Nacht oft in riesigen Massen am Strande. Da sie rasch faulen, verbreiten diese Haufen rasch einen sehr üblen Geruch. Die an den Küsten der Hebriden ausgeworfenen Laminariastipites waren oft 7–8 Fuß lang, an der norwegischen Küste wurden sogar 5 m lange Stipites beobachtet.
Die nahe verwandte L. flexicaulis LE JOLIS (L. digitata (L.) var. α flexicaulis, L. stenophylla HARVEY, L. digitata var. stenophylla HARV., L. ensifolia KTZ.) hat einen schmalen, in wenig Lappen geteilten Laubteil und einer dünnen, biegsamen, nicht starren, dunkelbraunen, fast schwarzen Stipes. Nach FOSLIE fehlen dieser Art, die ruhigere Standorte und geringere Tiefe vorzieht, im Stipes die Hohlräume und die Schichten, die Blätter erneuern sich nicht so regelmäßig und das Blatt nimmt erst später seine endgültige Form an. Die Auswitterungen bestehen bei dieser Alge aus Mannit.
Lam. Clustoni findet sich in den nordischen Meeren, z. B. bei Nordost-Finmarken, längs der norwegischen Küste, bei Dänemark, in der Nordsee an den Küsten von Deutschland, Nordfrankreich, England, Irland und Schottland, bei Spitzbergen und Grönland. Sie geht weiter in die See hinaus als L. flexicaulis.
Lit. CLOUSTON in ANDERSON, Guide to the highlands and islands of Scotland. London 1834. Append. VI, 721. (CLOUSTON studierte zuerst die Entwicklung.) — FOSLIE s. unten. — LAMOUROUX, Dissert. sur plus. esp. de Fucus. Agen 1805. — HARVEY, Phycologia britannica. London 1846–51, t. 223. — DE TONI, Sylloge algarum omnium hucusque cognitarum. Vol. III Fucoideae. — LE JOLIS, Exam. d. espèc. confond. sous le nom de Laminaria digitata Mém. soc. sc. nat. Cherbourg 2 ed. 1855 u. Nov. act. Ac. Leop. Carol. 1856 (Flora 1855. Jahresb. d. Pharm. 1867, 23). — EDMONSTON, Flora of Shetland. Aberdeen 1845, 54. — AGARDH, Spec., genera et ordin. algarum. Lund 1848. — KÜTZING, Phycol. gener. Lips. 1843. — GRABENDÖRFER, Diss. Straßb. 1885. Bot. Zeit. 1885. — HAAXMANN, Tijdsch. v. wetensch. Pharm. III, 33. — ESPER, Icones Fucorum I, t. 48. — HARTWICH, Laminaria in Realenzyklopädie. — COHN, Arch. Pharm. 179 (1867), 113. — Weitere Lit. bei KJELLMANN in ENGLER-PRANTL, Pflanzenfam.
Abbild.: LUERSSEN, Medic. pharm. Botan. I, 98, Fig. 23. — KARSTEN, Deutsche Flora 275. — PABST-KÖHLER, Medizinalpfl. — KJELLMANN in ENGLER-PRANTL, Pflanzfam. Alle Formen in: FOSLIE, D. Laminar. Norwegens. Christiania. Vidensk. Selsk. Forhandl. 1884. 10 Taf. (Bot. Jahresb. 1884, 379.) — HARVEY a. a. O. — POSTELS u. RUPRECHT, Illustrat. algar. oceani pacifici. Taf. 12. — Anatom. Abb. PLANCHON-COLLIN, Dr. s. p. 13. — Erste Abbildung unter dem Namen Fuco giganteo in FERRANTE IMPERATO, Dell’ historia naturale 1599, Fol. 743.
Pathologie. ROSTRUP (Mykologiske Meddelelser (V). Botanisk Tidsskrift Vol. 19, 1895) beschreibt eine Dothidella Laminariae, welche den Stipes von Laminaria longicruris befällt. Ferner geben COOKE und MASSEE auf Laminaria flexicaulis ein Heterosporium Algarum und auf faulenden Laminarienspreiten ein Phoma Laminariae an; indes bleibt, namentlich im letztgenannten Falle, die Frage offen, ob es sich wirklich um einen Parasiten handelt (ED. FISCHER). Die Polypen und Florideen pflegen die Stipites der Laminaria flexicaulis zu meiden, während sie sich oft in großer Zahl auf denen der L. Clustoni finden. Über die Epiphyten der Laminarien vgl. auch F. TOBLER, Englers Botan. Jahrb. 44 (1909).
Morphologie. Die Droge bildet verschieden lange, von der Seite fast bandartig zusammengedrückte, hornartig harte, derbe Stücke, die glatt brechen und außen grob längsrunzelig sind. Sie sind außen schwarzbraun, innen grauweiß. Der Querschnitt ist länglich oval mit tiefbuchtigem Umriß — beim frischen Stipes kreisrund —, der Durchmesser c. 10 : 6 mm (frisch meist 25–30 mm, aber bis 40 mm). Die Stücke quellen in Wasser auf und sind außen meist mit kleinen roten Florideen (Ceramium, Polysiphonia, Dictyosyphon) und mit Kristallkrusten oder Effloreszenzen besetzt, die vorwiegend aus Natrium-Sulfat und Chlorid bestehen — bei Lam. flexicaulis enthalten die letzteren Mannit. Das Lupenbild läßt eine schmale Rindenschicht, eine breite Mittelschicht und eine dunkele, bisweilen geschwundene Markschicht unterscheiden.
Aus diesen eingetrockneten Stipites, und zwar besonders aus der mittleren Schicht derselben, werden Voll- und Hohlstifte (Laminariastifte, Laminariakegel, Quellmeißel) gedrechselt. Legt man dieselben in Wasser, so schwellen sie langsam auf das vier- bis fünffache ihres Durchmessers an. Die unbearbeiteten Stipites selbst sind nicht in Gebrauch.
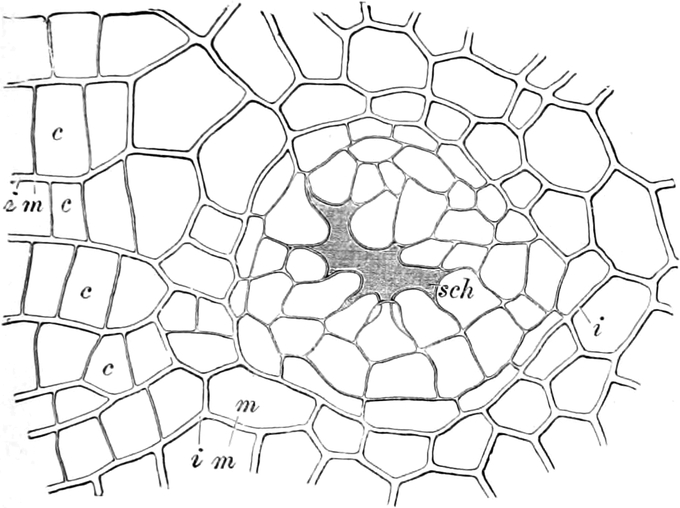
Fig. 102.
Schleimkanal aus der Rindenschicht eines
Laminaria
-Stipes. C. Meristem.
[
Tschirch
.]
Anatomie. Ich beschränke mich auf die Anatomie der allein offizinellen Stipites. Der frische Stipes ist 3–4 cm dick. Die Randpartie des Stipes ist engzellig und enthält, da sie das Assimilationsgewebe repräsentiert, reichlich Chromatophoren, die auch in den folgenden Schichten, dort aber in geringerer Zahl auftreten. Der Zellinhalt dieser und der anderen Schichten kann, wie schon WILLE hervorhob, nur an ganz frischen lebenden Exemplaren studiert werden. Er ist äußerst empfindlich. An frischen Exemplaren — mir lagen solche aus Helgoland vor — findet man gut wahrnehmbare (bisweilen auch noch am trockenen Stipes deutliche) rundliche oder gelappte braungrüne Chromatophoren, deren brauner Farbstoff leicht in das Wasser diffundiert. Alsdann bleiben die Chromatophoren grün gefärbt zurück. In der nächstfolgenden Schicht liegt eine Reihe von Schleimhöhlen. Dieselben entstehen in der Weise, daß zunächst an einer zentralen Zellgruppe durch Aufquellen der Interzellularsubstanz (Mittellamelle) ein schmaler, schleimerfüllter, schizogener Gang entsteht. der Gang sich dann erweitert und schließlich die Randzellen thyllenartig in den Gang hineinwachsen (TUNMANN), vgl. Fig. 102. Lysigene Erweiterung, die ich auf Grund analoger Beobachtungen bei Phanerogamen annahm (Angew. Anatomie Fig. 600), scheint nicht vorzukommen oder doch selten zu sein. Ich fand gelegentlich losgelöste Zellen im Innern. Die Schleimhöhlen sind langgestreckte, verschieden breite Kanäle. Sie fehlen ganz jungen Stipites, in der Handelsware sind sie ausnahmslos zu finden, nie in den Stiften. In der Nähe dieser Schleimhöhlenschicht, sowohl außerhalb wie innerhalb derselben, fand ich in den Zellen frischer Stipites der Wandung ansitzende wulstig-traubige, cystolithenartige Körper, die bei näherer Betrachtung sich als Bläschenhaufen erwiesen, bei denen jedes Bläschen eine dünne, wahrscheinlich von Öl oder Plasma gebildete Haut und einen wässrigen Inhalt führt. Tritt gewöhnliches (nicht Meer-) Wasser hinzu, so fließen die zahlreichen Bläschen zu einer großen, mit einer stark lichtbrechenden Flüssigkeit erfüllten Blase zusammen. Schließlich platzt auch diese und man sieht an der Stelle dann nur einige Öltröpfchen liegen. Die Schleimhöhlenschicht besitzt eine braungrüne Farbe, das ganze Innere ist farblos und hebt sich erstere als sog. Rindenschicht auch noch dadurch relativ scharf von dem zentralen Gewebe stark ab, daß innerhalb der Schleimhöhlen ein Meristem zu liegen kommt, welches durch seine cambialen Teilungen das sekundäre Dickenwachstum der Stiele bewirkt. REINKE nennt die außerhalb des Meristems liegende Zone Außenrinde. In der Zone, wo die einen ringsumlaufenden Kranz bildenden Schleimhöhlen liegen, reißt das Gewebe leicht, so daß sich oft die ganze braune Rindenschicht als Röhre ablöst.
Die Zellen der mittleren, an das sog. Cambium nach Innen zu angrenzenden Partie sind rundlich eckig, in der Organsachse gestreckt und lassen sich von der Initialzelle aus oft auf weite Strecken in radialen Reihen verfolgen. Die Zellen der äußeren Reihen sind kurz, an den Enden stumpf oder spitz oder mit querverlaufender Wand. Nach innen zu werden sie immer länger und spitzer. An der radialen Längswand sind große Tüpfel häufig (Fig. 101, D). Die zwischen der Zuwachszone und dem «Mark» liegende Partie (REINKES Innenrinde), die oft die Hauptmasse des Stipites ausmacht, zeigt häufig konzentrische Zonen engerer Zellen, wodurch ein Querschnittsbild ähnlich den Jahresringen eines Coniferenstammes entsteht (Fig. 101 B). Nicht selten kann man 8–20 solcher «Jahresringe» zählen. Einige Autoren halten sie auch für echte Jahresringe. Es sind aber wohl nicht echte Jahreszuwachszonen, sondern nur abwechselnde Schichten mechanischen und Speicher-Gewebes. Wie N. WILLE 1885 gezeigt hat, besitzen auch die höheren Algen ein Assimilations-, ein Speicher-, ein Leitungs- und ein mechanisches Gewebe. Das Assimilationssystem befindet sich bei Laminaria vornehmlich in den blattartig ausgebreiteten Thalluslappen und in der Randschicht der Stipites, das Leitungssystem auch im Stipes und das mechanische und Speichersystem vorwiegend in diesem.
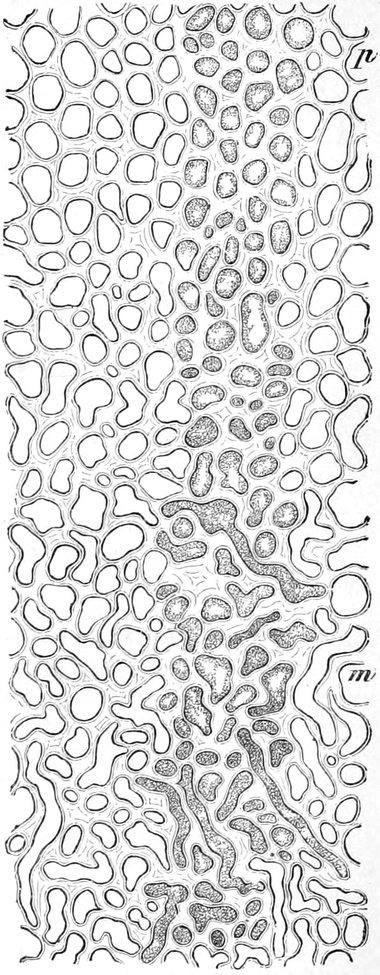
Fig. 103.
Querschnitt durch einen aufgequollenen Laminaria-Stipes. m Markschicht.
[
Luerssen
]
Gegen das Zentrum des Stipes hin geht das Gewebe ziemlich unvermittelt in ein krauses Durcheinander fädiger, hyphenartiger Zellen über. Diese Schicht ist die sog. Markschicht Fig. 103, m). In ihr liegen die leitenden Organe, die Siebhyphen (Fig. 101, C). Die von H. WILL zuerst bei Macrocystis beobachteten Siebhyphen (Siebröhren) fand N. WILLE auch bei Laminarien. Hier sind die Enden der relativ englumigen Röhrenglieder, ähnlich wie bei den Siebröhren der höheren Pflanzen, angeschwollen. Die Querwände sind fein perforiert, der Inhalt plasmareich. Die längsverlaufenden Siebröhren stehen durch zahlreiche Queranastomosen in Verbindung. Das Siebröhrensystem des Stammes setzt sich auch in die Gewebelamelle zwischen den beiden assimilierenden Schichten der Blätter fort.
Besonders in der Mittel- und Markschicht sind die Membranen stark verschleimt und zwar ist es fast ausschließlich die Mittellamelle (Interzellularsubstanz), welche den Schleim liefert. Dieselbe schwillt oft bis zu einer erheblichen Dicke an, während die sekundären Membranverdickungsschichten stets dünn bleiben oder nur schwach quellen. Doch sei bemerkt, daß die schleimige Interzellularsubstanz als solche von vornherein angelegt wird und nicht etwa nachträglich aus einer Zellulosemembran umgebildet wird. Durch Einlegen in Kupferacetat läßt sich der Schleim härten (TUNMANN). Die Schleimmembran ist eine besondere chemische und morphologische Form der Membran vom Charakter der (schleimartigen) Hemizellulosen. Die breite Interzellularsubstanz gibt mit Jodschwefelsäure keine oder nur sehr schwache Zellulosereaktion, mit HANSTEINS Anilinviolett färbt sie sich nur schwach. Die schmale sekundäre Membran zeigt starke Zellulosereaktion und färbt sich auch mit HANSTEINS Anilinviolett intensiv. Besonders tritt Bläuung mit Jodschwefelsäure dann auf, wenn die Schnitte vorher mit verd. Kali behandelt werden. Die Wandungen nehmen erst beim Trocknen braune Farbe an (WILLE).
Die starke Quellung der Lamarienstiele ist auf die Quellung der verschleimten Zwischenzellsubstanz zurückzuführen. Er ist also eine Schleimmembranquellung. Die Schleimhöhlen der Rindenschicht haben gar nichts damit zu tun, übrigens schon deshalb nicht, da diese sich niemals in den gedrechselten Stielen, die nur aus den inneren Schichten hergestellt werden, findet. In den Zellen von lebendem Material fand TUNMANN Zucker. Die kleinen mit Osmiumsäure sich bräunenden Bläschen reagierten auch mit Vanillinsalzsäure, Jod- und Eisensalzen (TUNMANN). Kristallbildungen fehlen, doch erhielt TUNMANN durch Einlegen frischer Stiele in Alkohol Calciumoxalatkristalle. Er nimmt an, daß die Zellen des Markes gelöstes oxalsaures Natrium enthalten, das sich mit dem Kalk zu Calciumoxalat umsetzt. Florideenstärke (Amylodextrin) ließ sich mikrochemisch nicht nachweisen. Die eigenartigen Körnchen, die man besonders in dem Speichergewebe antrifft, scheinen Eiweißcharakter zu besitzen, jedenfalls kein Kohlenhydrat zu sein und einen gerbstoffartigen Körper einzuschließen (TUNMANN). Diese Körnchen, die HANSTEEN Fucosan, SCHIMPER Phaeophyceenstärke, CRATO, der sie für amöboid bewegliche, plasmatische Bildungen erklärt, Physode nannte, zeigen nämlich auch Phenolreaktionen, besonders mit Vanillinsalzsäure (CRATO, BRUNS). Der Ausdruck Phaeophyceenstärke ist also jedenfalls verfehlt und irreführend.
Fig. 104.
Querschnitt durch einen eingetrockneten
Laminaria
-Stipes.
[
Luerssen
.]
An den Stipites der ähnlich gebauten Alaria esculenta (L.) GREV. kann man nach WILLE vier Zonen unterscheiden. Die äußerste Zone ist das Assimilationsgewebe, in dem sich die Chromatophoren finden und das zugleich als Bildungsgewebe fungiert, sich auch, wenn abgestoßen, leicht wieder regeneriert. Dann folgt die Hauptmasse, die zugleich mechanischen, Leitungs- und Speicher-Zwecken dient und die wenige Chromatophoren, aber viel Reservestoffe (Fucosankörner) enthält. Dann folgt die Schicht der Verbindungshyphen und das Zentrum ist wieder mechanisches Gewebe. Gestreckte (den Siebröhren der höheren Pflanzen entsprechende) Siebhyphen — bisweilen mit Callus auf der Siebplatte — sind (nach WILL und WILLE) besonders im Inneren reichlich vorhanden, ebenso wie die der gleichen Funktion dienenden Verbindungshyphen (true sieve tubes, trumpet hyphae, OLIVER). In den zugleich mechanischen und speichernden Zellen finden sich neben Chromatophoren Fucosankörner. Da die Stipites dieser Alge wegen des zentral gelegenen mechanischen Gewebes viel biegungsfester sind als die Laminariastipites, Alaria esculenta (L.) GREV. zudem in den norwegischen Meeren häufig ist, so dürfte es sich empfehlen, auch aus dieser Alge Stifte zu drehen. (Sie soll übrigens — nach KRÄMER — bereits hierzu benutzt werden.)
Lit. TSCHIRCH, Angew. Anat. und Über d. Entwicklungsgeschichte einiger Sekretbeh. Ber. d. bot. Ges. 1888, S. 5. — GRABENDÖRFER, Beitr. z. Kenntn. d. Tange. Dissert. Straßburg 1885 (auch Botan. Zeit. 1885). — KÜTZING, Phycol. gen. Taf. 31. — RUPRECHT, Bem. über d. Bau u. d. Wachsth. einiger großer Algenstämme u. d. Mittel d. Alter ders. zu bestimmen. Mém. de l’acad. Petersb. 1848. — LUERSSEN, Med. pharm. Bot. I, S. 100–102. — VOGL, Kommentar 1892. — GUIGNARD, Observ. sur l’appar. mucif. des Lamin., Ann. sc. nat. ser. 7, T. 15 (1892). — HANSTEEN, Stud. z. Anat. u. Phys. d. Fucoid. Pringsh. Jahrb. 24 (1892). — CRATO, Ber. d. bot. Ges. 11 (1893) u. bot. Zeit. 1893, 157. — BRUNS, Flora 1894, Ergb. S. 173. — J. REINKE, Atlas der Meeresalgen. 1889–92, Beitr. z. Kenntn. d. Tange. Pringsh. Jahrb. 10 (1875) und Unters. über d. Quellung einiger vegetabil. Subst. HANSTEINS bot. Abh. IV (1879). — WILLE, Siebhyphen bei d. Algen. Ber. d. d. bot. Ges. 1885. Bidrag til Algernes physiolog. Anat. Svensk. Vetensk. Akad. Handl. 1885 u. Beitr. z. phys. Anatom. d. Laminariaceen. Festschr. z. Kön. Oscars Reg. Jubil. 1897. — TUNMANN, Zur Kenntn. d. Laminaria. Pharm. Zentralh. 1907, 241 u. 505. Schweiz. Wochenschr. 1910, 537 (dort die Reaktionen des Fucosans). — KRAEMER, Textbook 1907. — Anatom. Abbild. auch in PLANCHON-COLLIN, Drog. simpl. I, 13.
Chemie. Die Interzellular- oder Bindesubstanz, die so gut wie ausschließlich die quellende Substanz der Stiele repräsentiert, enthält stets Calcium. WILLE und KREFTLING betrachteten sie als Calciumpektinat (FRÉMY) resp. als das Calciumsalz einer Tangsäure, die offenbar nahe Beziehungen zur Pektinsäure GIREAUDS besitzt. Extrahiert man den Kalk aus der Interzellularsubstanz durch Salzsäure, so quillt der Schleim mit verdünnten Alkalien gewaltig und löst sich dann rasch (WILLE), viel rascher als ohne diese Vorbehandlung. Er zeigt nun ausgesprochenen saueren Charakter. A. KREFTLING nimmt daher an, daß die Interzellularsubstanz aus der Kalkverbindung der Tangsäure besteht, die 39% C und 5% H enthält und in Wasser ohne sich zu lösen außerordentlich stark quillt. KREFTLINGS Tangsäure ist N-frei und soll der Formel C13H20O14 entsprechen. Sie bindet 97% Wasser und löst sich nur in Substanzen mit denen sie Verbindungen eingeht. Die Tangsäure lieferte KREFTLING einen reduzierenden Zucker. Auch MANGIN hält die Bindesubstanz der Zellen für einen Pektinkörper. In der Tat bestehen ziemlich viele Beziehungen zu den Pektinsubstanzen der Früchte (TSCHIRCH).
Die Zellwände enthalten Zellulose (WISSELINGH), nach WARRINGTON 9,33%, die Mittellamelle auch einen mit Jod und 1% H2SO4 sich blaufärbenden Körper (Fucin, WISSELINGH). Das beim Erhitzen von Fucus mit Schwefelsäure übergehende Fucusol (STENHOUSE) ist ein Gemisch von Furfurol und Methylfurfurol (MAQUENNE). Die Entstehung dieser Körper deutet auf das Vorhandensein von Pentosanen und Methylpentosanen. In der Tat erhält man bei der Hydrolyse von Fucus eine Methylpentose, die Fucose (die optische Antipode der Rhodeose, TOLLENS und GÜNTHER) von der Formel:
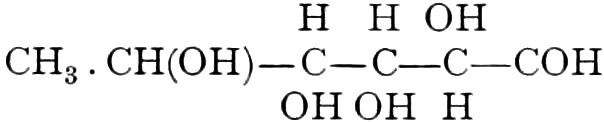
Die Membran enthält also ein Fucosan. BIELER und TOLLENS erhielten auch aus Laminarien Methylfurfurol:
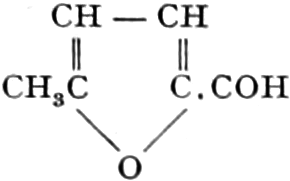
so daß wohl anzunehmen ist, daß die Fucus- und Laminaria-Membranen im wesentlichen übereinstimmen. Auch Glukuronsäure (vgl. S. 77) scheint in der Laminaria vorzukommen (TOLLENS). Laminariaschleim gibt bei der Hydrolyse Dextrose (BAUER). KÖNIG und BETTELS erhielten aus Laminaria japonica (und einer anderen Laminariaart): Glukose, Fruktose, Pentosen und Methylpentosen (aber keine Galaktose).
SCHMIEDEBERG erhielt aus Laminaria zwei den Kohlehydraten nahestehende Substanzen des Laminarin (C60H102O51) und die stark quellbare Laminarsäure (C12H18O11). In den beim Liegenlassen von Laminarien an der Luft bei Regenwetter austretenden Schleimblasen fand STANFORD Algin, das Ca-Na-Mg-Salz der Alginsäure. Das Natriumalginat kommt in den Handel. Es ist eine außerordentlich zähe Masse (37mal zäher als Gummi arabicum). Das Algin des Handels wird durch Ausziehen der Laminarien mit Sodalösung dargestellt. Schon eine 2%ige Lösung ist dick, eine 5%ige gelatinös. Auch hier treten also Beziehungen zum Pektin hervor. Die Tangsäure (KREFTLING), die Laminarsäure (SCHMIEDEBERG), die Alginsäure (Algin, STANFORD), die Alginicinsäure und die sog. Pektinsäure (?) sind wohl dieselbe Substanz in verschiedenen Reinheitsgraden. Die reine Substanz ist aber noch nicht erhalten worden.
Im lufttrockenen Stipes von Lam. digit. finden sich nach AXEL KREFTLING: in kaltem Wasser lösliche Schleimsubstanz 47,4%, Tangsäure 19%, Zellulose 10,9%, in Wasser lösliche Salze 8,6%, in Wasser unlösliche anorganische Salze 4,4%, Wasser 7,8%. Nach KÖNIG und BETTELS enthält luftrockene Laminaria in Prozenten: 6,16 Wasser, 8,19 Gesamtstickstoffsubstanz, 5,68 wasserlösliche Stickstoffsubstanz, 0,5 Ätherauszug, 36,04 stickstofffreie Extraktstoffe, 6,66 Pentosane, 1,12 Methylpentosane, 11,27 Rohfaser, 30,06 Asche, 16,47 Chlornatrium. Durch Dämpfen wird in Wasser löslich: 29,39% anorganische und 50,85% organische Substanz. Von den Meeresalgen sind die Porphyraarten sehr reich an Proteïn, Laminaria, Cystophyllum und Enteromorpha reich an Pentosanen.
Die Elastizitätsgrenze sinkt bei steigendem Wassergehalt. Das Elastizitätsmodul beträgt bei 40% Wassergehalt 24,5, bei 90%: 9, bei 140%: 3, bei 230%: 1,7, bei 350%: 1,5 (J. REINKE). Durch Einlegen in Wasser vergrößert sich der Durchmesser der Laminarienstäbchen um 72%, ein Kanal von 50 mm wird auf 147 mm erweitert (COHN). Auch Mannit (5–6%, STENHOUSE) und Dextrose sind aus Laminarienstipites (von L. flexicaulis, weniger von L. Clustoni) erhalten worden. Es scheint aber, daß diese Körper erst in den abgestorbenen Tangen auftreten [PHIPSON (1856), SOUBEIRAN (1857)], also wohl erst abgespalten werden (Laminaria saccharina LAMX. enthält bis 12% Mannit). Nach BRUNS kommt Fett und Phloroglucin (?) im Inhalte vor. Über das Fucosan vgl. oben S. 298.
Der Farbstoff der Chromatophoren trockener Laminarien (der sich aber vorwiegend in dem Blatteile, weniger im Stipes findet) ist ein Mischfarbstoff. Er wurde von COHN Phaeophyll genannt. Er besteht aus braunem, wasserlöslichem Phycophaein (MILLARDET), das keine Absorptionsbänder besitzt, sondern nur kontinuierliche Absorption des Rot bis 0,680 µ und des übrigen Spektrums bis 0,620 µ zeigt (SCHÜTT), gelbem, alkohollöslichem Phycoxanthin (MILLARDET), das wohl mit dem Carotin bzw. Xanthocarotin, d. h. dem Xanthophyll der Autoren ex parte, verwandt oder damit identisch ist (HANSEN, GAIDUKOW) — ich nannte den Körper η-Xanthophyll — und grünem Chlorophyll (MILLARDET, ARDISSONE, HANSEN). Chlorophyll und Phycophain sind vielleicht chemisch miteinander verbunden (ENGELMANN). Die lebenden Phaeophyceen enthalten kein wasserlösliches Pigment (Phycophaein). Ihre Chromatophoren sind nach TSWETT durch Chlorophyll, Karotin, Fucoxanthin und Fucoxanthophyll tingiert.
Die Asche beträgt 14,02% (FLÜCKIGER), 14–18% (STANFORD), 18,64% (GOEDICHEN). Darin sind 11,86% Kalk (sie ist also kalkreich), 22,4% Kali, 24,09% Na, 7,44% Magnesia, 0,62% Eisen, 2,56% Phosphor, 13,26% SO3, 1,56% SiO2, 17,23% Cl, 3,08% J; nach FLÜCKIGER kein Mangan. STANFORD fand in der Asche Jodide und viel Calciumcarbonat (20%), im ganzen 40% Salze. Nach WOLFF differiert Menge und Zusammensetzung der Asche je nachdem man die Stipites im Frühling oder Herbst untersucht ziemlich beträchtlich, nur Phosphorsäure und Jod bleiben etwa gleich. Er fand Jod: 1–1,2%, Chlor in Frühlingsmaterial 28,35%, in Herbstmaterial 38,67% der Asche.
Wichtig ist besonders der Jodgehalt, da die Laminarien der nördlichen Meere noch jetzt zur Jodgewinnung herangezogen werden. [Nur Laminarien nicht Fucusarten liefern den Kelp (Drift Kelp)]. Um Jod nachzuweisen, darf man nicht veraschen, sondern muß unter Zusatz von Zinkstaub, Bimstein oder Kieselgur verkohlen (FLÜCKIGER) oder man destilliert mit Braunstein und Schwefelsäure das Jod ab (JONES). Es enthalten Jod (nach STANFORD) in Prozenten der Trockensubstanz: Laminaria digitata (Stamm) 0,4535, (Laub) 0,2945; Lam. stenophylla (Stamm) 0,4028, (Laub) 0,4777; Lam. saccharina 0,2794, Lam. bulbosa 0,1966, Fucus serratus 0,0856, F. nodosus 0,0572, F. vesiculosus 0,0297. MARCHANDS Angabe, daß Laminaria 5% Jod enthalte, ist ein Irrtum. [Japan. eßbare Meeresalgen enthalten 0,3171 J, Chondrus crispus Spuren, Gelidium corneum dito, Gigartina spinosa nichts.] Nach GAUTIER enthält Laminaria 12 mg Jod auf 100 g frische und 60 mg auf 100 g trockene Substanz. Laminaria enthält das Jod fast ausschließlich in organischer Form, in ähnlicher wie es im Jodothyrin (oder Jodospongin HUNDESHAGENS aus Spongien) enthalten ist und zwar scheinen mehrere organische Jodverbindungen in Betracht zu kommen, solche, welche sich in Wasser, Alkohol, Aceton, Alkalien und Säuren lösen und solche, die in diesen Lösungsmitteln unlöslich sind. Letztere bilden die Hauptmenge (ESCHLE). Wahrscheinlich bedingen diese organischen Jodverbindungen die Benutzung der Fucoideenextrakte (Extr. fucus vesiculos., Extr. Laminariae) zu Entfettungskuren. Der Gehalt der Asche an Brom beträgt wohl selten mehr als 0,2%.
Entdeckt wurde in den Tangen das Jod 1813 durch COURTOIS (mitgeteilt von DESORMES und CLÉMENT, Schweigg. Journ. 9, 339), das Brom 1826 durch BALARD. Der Jodgehalt beträgt in % bei Ecklonia cava (Kajime), Stengel 0,14831; Ecklonia cava (Kajime), Laub 0,00177; Ecklonia bicyclis (Arame) 0,00028; Cystophyllum spec. (Nagahijiki) 0,00506; Arthrothamnus bifidus (Neckoashi Kombu) 0,223; Laminaria japonica (Ma-Kombu) 0,106; Laminaria religiosa (Hosome Kombu) 0,127; Laminaria longissima (Naga Kombu) 0,173; Laminaria angustata (Mitsuishi Kombu) 0,180, (Rijiri Kombu) 0,188; Laminaria diabolica (Oni Kombu) enthält auch Jod (DAVIDSOHN).
Der Jodgehalt beträgt bei Ecklonia cava in den einzelnen Monaten (nach DAVIDSOHN):
In den Stengeln:
Jan. Febr. März April Mai Juni Juli Aug. Sept. Okt. Nov. Dez.
Im Laub:
TUNMANN fand im Stipes von Lamin. 0,059–0,108%, im Blatteil 0,071–0,154% Jod der Trockensubstanz. Der Blatteil ist also jodreicher. Das weiß auch bereits die Industrie. ALLAZY fand, daß Varech aus der ganzen Pflanze 0,06, aus dem alten Blatte 0,057, aus dem unteren Teile des altes Blattes 0,108, aus dem neuen Blatte 0,122% Jod enthielt. TUNMANN gelang es auch noch in 1–2 mgr Substanz Jod mikrochemisch nachzuweisen. Er legte neben die Schnitte Stärke und ließ starke Salpetersäure zufließen. Auf diese Weise gelingt noch der Nachweis von 2⁄1000 mgr Jod. TUNMANN fand Jod besonders in der Mark- und Rindenschicht und nur im Zellinhalte. Die Jodverbindung ist leicht in Wasser und Alkohol löslich.
Die Effloreszenzen auf den trockenen Stipites sind vorwiegend Natriumsulfat.
Lit. STENHOUSE, Lieb. Ann. 74 (1850), S. 278. — MAQUENNE, Compt. rend. 109 (1889). — STANFORD, Econom. applicat. of seaweed. Pharm. Journ. 1884, XIV, 1009 u. flgd. (Pharm. Zeit. 1884, 507) und Chem. news 1883; auch Pharm. Journ. XIII (1883), 1019, 1037. Journ. chem. soc. 1886, 218. — BAUER, Über eine aus Laminariaschleim entstehende Zuckerart. Ber. d. chem. Ges. 22 (1889), 618. — GÜNTHER u. TOLLENS, Über d. Fucose. Ebenda 23 (1890). — MANGIN, Sur la callose, Compt. rend. 110 (1890). Rech. sur l. compos. pectiques. Journ. de bot. 1893. — BIELER und TOLLENS, Ber. d. d. chem. Ges. 22, 3063. — MUTHER u. TOLLENS, Ber. chem. Ges. 1904, 298 u. 306. — TOLLENS (Glukuronsäure-Reaktion), Ber. d. d. chem. Ges. 1908, 1789. — — SCHMIEDEBERG, Tagebl. Naturf. Vers. 1885, 231 (Pharm. Jahresber. 1885, 23). — WILLE a. a. O. — JONES, Chem. News. 48, S. 296. — GAUTIER, Compt. rend. 129 (1899), 189 und ebenda 1900. — ESCHLE, Zeitschr. phys. Chem. 1897, 23, 30 (Ph. Zeit. 1897, 607). — KÖNIG und BETTELS, Die Kohlehydrate der Meeresalgen. Zeitschr. Unters. d. Nahrungs- u. Genußm. 10. — WARINGTON, Chem. News 40, 195. — MARCHAND, Ann. chim. phys. 8 (1866), 320. — Farbstoff: HANSEN, Bot. Jahresber. 1885, I, 404. — REINKE, Beitr. z. Kenntn. d. Phycoxanthins. Pringsh. Jahrb. 10, 399. — Analysen von Laminaria japonica von KELLNER, NAGAI und MURAI bei KÖNIG, Nahrungsm. — CZAPEK, Biochemie. — Nachweis des Jods in den Algen: FLÜCKIGER, Arch. d. Pharm. 225 1887), 519 und Pharmakogn. III (Zinkstaub). — JONES, Ber. d. chem. Ges. 17, Ref. S. 53 (1884). — WEIS, Chem. Centralbl. 1903, I, 1158. — RIEGLER, Ebenda 1903, II, 772. — TUNMANN, Über d. J. u. d. Nachweis desselb. in d. Laminaria. Pharm. Centralh. 1907, 505. — JUSTUS, Virchows Arch. 170 (1902), 501. — DAVIDSOHN, Imp. inst. Tokio in Pharm. Journ. 1906, 346.
Anwendung. In der Medizin finden die aus den Stipites gedrechselten Stifte (Laminariastifte, L.-Kegel, Quellmeißel) Verwendung — zur Erweiterung von Öffnungen, zum Offenhalten von Wunden und als Quellmeißel und Sonden — an Stelle des Preßschwammes. Sie quellen sehr langsam und erreichen in 24 Stunden ihr Quellungsmaximum. Da das Quellungsvermögen in der Markschicht am größten ist und nach außen hin abnimmt, müssen die Stifte, damit sie gleichmäßig quellen, möglichst genau in der Längsachse der Stiele gedrechselt werden. Die Stifte quellen in destilliertem oder kochsalzhaltigem Wasser besser als in kalkhaltigem. Die Laminariastäbchen sind entweder solide (Vollstifte) oder hohl (Hohlstifte). Es werden jetzt im Handel angeboten: Vollstifte von 1,5, 2, 3, 4, 5, 6, 7 und 8 mm Durchmesser und 8, 10, 20 und 30 cm Länge, Hohlstifte von 4, 5, 6, 7 und 8 mm Durchmesser und 8 bzw. 10 cm Länge, sowie conische 4,5 cm lang (CAESAR u. LORETZ, 1910). Neuerdings kommen sie auch sterilisiert (STICH) und imprägniert in den Handel. Auch ein Blutstillungscharpie wird aus den getrockneten Stipites hergestellt.
Sonst werden die Laminarien auch als Viehfutter und Düngemittel benutzt. Die mannithaltigen Teile der Lamin. flexicaulis, besonders die unteren Enden der Stiele, werden gegessen, ebenso Lam. saccharina (und Sargassum) im Mittelmeergebiet. Laminaria saccharina enthält 7,79% des Trockengewichtes N-haltige Substanzen (WARINGTON). Die japanische Algenkonserve, Naga-Kiri-Kombu (kombu = Seekraut), besteht aus der in Streifen geschnittenen Lamina von Laminaria japonica ARESCH. (SENFT). Die umfangreichste Verwendung ist die zur Jodbereitung (s. unten). Neuerdings dienen Fucusextrakte als Entfettungsmittel (s. oben). In Lahore und Kaschmir wird Lamin. saccharina als Galhár-Kapalta gegen Kropf, im Himalaya bei Syphilis benutzt. Hai-tao ist eine der Laminaria digitata nahestehende Meeresalge, wahrscheinlich L. bracteata, 1 m und darüber lange, etwa 6 cm breite Streifen mit von Salzauswitterungen weiß bestäubter, schmutzigbrauner Oberfläche. Die Alge verleiht mit Wasser gekocht diesem eine schlüpfrige Beschaffenheit, weshalb sie zur Appretur Verwendung findet. In Japan und China wird sie gegessen. Sie dürfte identisch sein mit der Laminaria, die in China als «Hai-tai» und «Kwanpu» oder «Kai-wan» bei Menstruationsbeschwerden zur Erhöhung der Uterustätigkeit verwendet wird (GEHE 1898).
Die Tang-Jodgewinnung wird in Japan besonders in Hokkaido betrieben. Man benutzt außer Laminaria auch Eclonia-, Sargassum-, Arthrothamnus- und Cystophyllum-Arten. Die Fischer ziehen mit ihren Booten zu den Kelp-grounds und reißen die Algen mittelst Gabeln von den Felsen (I, Fig. 100, S. 102). Die getrockneten Algen werden dann in Höhlungen oder Herden verbrannt — richtiger verkohlt — der Kelp mit Wasser ausgezogen, die Lösung eingedampft und mit Braunstein und Schwefelsäure erhitzt. Zur Jodfabrikation werden an den Küsten von Frankreich (Normandie) und Schottland besonders Laminaria-, Alaria- und Fucus-Arten benutzt. Der Jodgehalt sinkt beim Verbleiben der Algen im Wasser. Man bringt daher die von Booten aus mit an langen Stangen befestigten Sicheln geernteten samt den bei stürmischem Wetter vom Meere ausgeworfenen Laminarien sofort an Land und verkohlt bald. 22 t Tang liefern 1 t Varech oder Kelp (Tangasche). Die Verarbeitung der Tange geschieht jetzt nicht mehr überall in den früher üblichen Gräben der Varechbrenner, sondern zum Teil nach dem Verfahren von PELLIEUX und MAZE-LANNAY. «Es beruht auf der Verarbeitung von Schnittalgen. Zur Trocknung der Tange dienen drei terrassenartige Erhöhungen. Die beiden unteren sind mit Cement belegt. Auf der obersten Terrasse beläßt man die Algen 4–5 Tage zum Abtropfen und oberflächlichen Trocknen. Auf der zweiten Etage läßt man sie in Gärung kommen; dabei entlassen sie eine Menge Flüssigkeit von einem im Vergleich zu den getrockneten Tangen höheren Jodgehalt. Diese Flüssigkeit wird daher gesammelt und abgedampft. Der Abdampfrückstand gelangt schließlich mit den auf der untersten Terrasse vollständig getrockneten Tangen behufs Veraschung in den Calcinierofen.» In 1000 kg Varech sind enthalten bei Laminaria stenoloba 0,57–1,22, bei L. digitata var. stenophylla 0,99, bei L. saccharina 0,44, bei Araria esculenta 0,10 kg Jod (ALLAZY).
KREFTLING gewinnt für technische Zwecke STANFORDS Alginsäure jetzt im Großen aus Laminarien Norwegens. Er nennt sie Tangsäure. Ihre Alkalisalze sind stark klebrig (s. oben S. 300).
Lit. STANFORD a. a. O. — KREFTLING, Über wichtige organ. Produkte aus Tang. Chem. Industrie 1897, Nr. 20 (Bot. Centralbl. Beihefte 1898, 519). — SENFT, Über einige in Japan verwendete vegetabil. Nahrungsm. usw. Pharm. Praxis 1906 u. 1907 (dort ein Verzeichnis der Laminariakonserven). — KRASSER in WIESNER, Rohstoffe. — ALLAZY, Bull. soc. chim. 38, 11. — Jodgewinnung in Japan: Govern. Rep. on the investig. on Marine Res. of Hokkaido und KINGO MIYABE, On the Laminariaceae and Laminaria Industries of Hokkaido (Pharm. Journ. 1906 Sept.)
Geschichte. WILSON empfahl zuerst die Anwendung der Laminariastäbchen in der Chirurgie. Aber schon 1834 hatte HÄBERL die Laminariastäbchen mit den zu gleichem Zwecke empfohlenen aus Enzianwurzel verglichen (WINCKEL). Sie werden etwa seit 1863 in der chirurgischen Praxis benutzt. Man hat es für möglich erklärt (DRAGENDORFF), daß das Erythrodanon des MARCELLUS EMPIRICUS eine Laminaria war.
Lit. HÄBERL, Neue Zeitschr. f. Geburtskunde I, S. 50. — WINCKEL, Göschens deutsche Klinik XIX (1867), 270; — Pharm. Jahresber. 1864, 280. — Vgl. auch RUSSEL, Fucus vesiculosus. Dissert. Oxon. 1750.
Paralleldrogen. Seit dreihundert Jahren ist die Eigenschaft der Wurzeln von Gentiana lutea in Wasser stark aufzuquellen bekannt. Dieselben wurden daher seit langem wie heute die Laminariastifte benutzt.
Neuerdings (seit 1879) wird das durch Pressen leicht auf ein geringes Volumen zu bringende Holz (Tupeloholz, Lign. Nyssae) der in den südlichen Vereinigten Staaten, besonders Südkarolina heimischen Cornacee, Nyssa aquatica L. (Nyssa multiflora WANGENH. und die verwandte N. biflora MICH.), einer Sumpfpflanze, in gleicher Weise zu Quellstiften benutzt. Nach MAISCH eignet sich Nyssa grandidentata noch besser dazu. Die daraus dargestellten sehr leichten, gelblich weißen sog. Tupelostifte quellen rasch auf ihr ursprüngliches Volumen, behalten dasselbe dann aber auch nach dem Trocknen bei. Der Vorgang beruht hier auf etwas ganz anderem wie bei den Laminariastiften, nämlich darauf, daß die Zellen des ungewöhnlich dünnwandigen Holzes (MOELLER) die Fähigkeit besitzen, durch Wasserentzug und Zusammendrücken stark zu kollabieren und durch Wasserzufuhr wieder auf das ursprüngliche Volumen zu gehen.
Lit. Nyssa: Pharm. Jahresber. 1879, S. 54 und 1884, S. 249, Arch. d. Pharm. 1879, S. 355 u. Pharm. Centralh. 1879, Nr. 6 (HAUBNER). — HAAXMANN, Ned. Tijds. 1879, S. 145. — J. MOELLER, Afrikan. Drogen, Lign. Nyssae. — Pharm. Centralh. 1883, S. 545 u. 581 (mit Abbild.). — Ph. Zeit. 1884. S. 59. — MAISCH, Am. journ. pharm. 1883, p. 631. — GEHE, Handber. 1880. — ENGLER-PRANTL, Pfl.-Fam.
Agar-Agar.
Unter dem Namen Agar-Agar werden sowohl einige kleine Meeresalgen der Abteilung der Florideen wie auch ein aus indisch-japanischen Florideen dargestellter eingetrockneter Schleim bezeichnet. Im Handel versteht man aber nur letzteren unter diesem Namen. Der Name Agar-Agar taucht in der europäischen Literatur zuerst bei CRAWFORD auf (History of the Indian Archipelago vol. III p. 46). Agar-Agar ist der malaiische Name für Gracilaria lichenoides. Gr. lichenoides var. tenuis heißt malaiisch: Agar-Agar Kuning, Javan.: Bulong, Makass.: Dongi-Dongi. Im Hind. Bomb. Bengal. bedeutet Agar etwas ganz anderes, nämlich Lignum Aloës! (DYMOCK). Im Japan. heißt Agar: kantén = kalter (klarer) Himmel, weil man es nur bereiten kann, wenn das Wetter kalt und trocken ist.
I. Unbearbeitete Algen.
1. Agar-Agar von Ceylon.
Syn. Ceylonmoos, Jafnamoos, Mousse de Jaffna, Alga ceylanica s. amylacea, Fucus amylaceus s. ceylanicus — shih-hwa-tsʾai (chin.) — chini-ghás (Ind. Bazars, bomb.) — kadal-pach-chi (tam.) — samudrapu-páchi (tel.) — kujáv-poen (burm.).
Stammpflanze. Gracilaria lichenoides GREVILLE (Sphaerococcus lichenoides AG., Fucus amylaceus O’SHAUGN., F. lichenoides L., F. gelatinosus KÖNIG, Plocaria candida NEES, Gigartina lichenoides LAMOUR.) in GREVILLE Alg. brit. 50, TURNER Fuci t. 118.
Systemat. Stellung. Florideae — Rhodymeliales — Sphaerococcaceae — Gracilarieae.
Die zierliche (gracilis, daher Gracilaria), in der Tat einer Flechte (daher lichenoides) äußerlich ähnliche Meeresalge, die im Indischen Ozean, an den Küsten von Ceylon, den Sundainseln und Burma vorkommt, bildet runde, nach dem Trocknen und Bleichen weiße oder grauweiße (lebend: blaß-purpurrote), wiederholt gabelig verästelte (daher Plocaria, von πλόκος, Geflecht) Fäden, deren Dicke zwischen der eines Zwirnfadens und der dünnerer Bindfäden schwankt. Der Thallus wird bis über 20 cm lang. In der Droge ist er meist stark zertrümmert. Jod färbt den Schnitt braunrot, beim Erhitzen rotviolett (daher: amylaceus). Die Randschicht besteht aus kleinen derben Zellen, die Markschicht aus großen weiten. In der kleinzelligen subepidermalen Zellschicht und vereinzelt auch in des großen Markschichtzellen finden sich kleine Stärkekörner und Körnchen, die mit Jod violett werden (Amylodextrinstärke?). Die Wände, besonders der Markzellen, färben sich mit Jod rot, beim Erhitzen geht die Farbe in violett über, ähnlich wie beim Amylodextrin. Auch der durch Auskochen der Droge erhaltene Schleim wird durch Jod violett. Die Fäden knirschen beim Drücken mit der Hand, quellen in Wasser nur wenig, entwickeln dabei aber den typischen Tanggeruch. Mit dem 50fachen Wasser gekocht liefern sie eine Gallerte.
Der Fucus amylaceus wurde 1834 von O’SHAUGHNESSY empfohlen und 1837 von PREVITÉ unter dem Namen Ceylonmoos in England eingeführt. Im deutschen Handel ist er seit 1841 (MARTIUS, Jahresber. d. Pharm. 1842, 241). Er wird in Indien als Nahrungsmittel benutzt, kann aber auch wie Carrageen (s. d.) benutzt werden (CRAWFORD). Im indischen Archipel und in China ist er längst in Gebrauch. Er ist wohl eine der von RUMPHIUS im Herbar. Amboinens. unter dem Namen Alga coralloides beschriebenen Pflanzen. In der Pharmakopoëa indica (1868) steht eine Decoction of Ceylon Moss [und (non officinal) Gillur ka putta von Laminaria saccharina].
Beigemengt ist der Droge bisweilen: Gracilaria confervoides GREV.
Als Paralleldroge gilt Gelidium cartilagineum GAILL. und Gigartina selacea LAMX. (Weitere Angaben in der Pharmakographia.)
2. Agar-Agar von Makassar.
Syn. Agar-Agar von Java, Alga spinosa, ostindisches Carrageen.
Stammpflanze. Eucheuma spinosum (L.) J. AGARDH (Fucus sp. L., Sphaerococcus sp. AG.).
Systemat. Stellung. Florideae — Gigartinales — Rhodophyllidaceae — Solicrieae.
Die im chinesischen Meere vorkommende Alge hat einen trockenen, etwa 2 mm dicken, stielrunden, rötlich-gelblichen, knorpeligen Thallus, der ziemlich reichlich mit dornigen Auswüchsen, den Cystocarpien, besetzt ist. In Wasser quillt sie auf die doppelte Dicke und wird hyalin. Sie zeigt oft weiße Salzinkrustrationen, dient auch zur Agar-Agar-Bereitung (s. unten) und in Japan zur Herstellung von Gelees (Abbild. nach KÜTZING bei KRASSER in WIESNER, Rohstoffe I, 645).
3. Japanisches Moos.
Stammpflanze. Gloiopeltis coliformis HARV., G. cervicornis SCHMITZ.
Systemat. Stellung. Florideae — Cryphonemiales — Gloiosiphoniaceae.
Diese in dem chinesisch-japanischen Meere vorkommenden Algen dienen den Japanern als billiges Nahrungsmittel und liefern einen zähen Schleim.
Viele Algen dienen in Japan als Nahrungsmittel. SENFT gibt folgende japanische Namen eßbarer Algen an:
Laminaria japonica = Konbu, Kobu, Hirome; Porphyra vulgaris = Asakusa-nori, Ama-nori, Alaria pinnatifida = Wakame, Chondrus spec. = Hijiki, Gelidium corneum = Tokoro Tengusa, Gracillaria confervoides = Ogo nori, Enteromorpha compressa = Ao nori, Phycoceris smaragdina = Ao sa, Tisanori, Hallymenia dentata = Tasaka nori, Halochtoa macrantha = Hondawara, Kawaramo (vgl. auch Useful plants of Japan, Edible Algae). Über eßbare Algen vgl. auch oben S. 303, 307 und 313.
II. Aus Algen dargestellte Gelatinen.
Agar-Agar von Japan.
Syn. Vegetabilischer Fischleim, japanische oder chinesische Gelatine, japanische oder indische Hausenblase, Gelose — japanese isingglaß, vegetable gelatine, sea-weed — in Japan: kanten — dschin-dschen, tjen-tjan (das quadratische), dschindschom, tientjan, tjientjan, tientjow, thao, lothaho, haitao, haitsai, haitsau, yang-tsai. In den ind. Bazars: chinighás. In den Preislisten auch: Gelatina japonica Tjen-Tjan. — MARCHAND schlägt vor das Agar Phycocolla zu nennen (im Gegensatz zu Ichthyocolla).
Stammpflanze. Die beste Sorte japanisches Agar-Agar wird von Gelidium-Arten gesammelt, hauptsächlich wohl von Gelidium Amansii LAMX. (= G. Swansii?), G. polycladum KÜTZ., G. elegans KÜTZ. (G. rigidum) — weniger von Gelidium japonicum OKAM. und G. subcostatum SCHMITZ — [Florideae, Nemalionales, Gelidaceae], in neuerer Zeit auch von Acanthopeltis japonica OKAM., ebenfalls ein Gelidiacee.
Andere Arten, welche zur Herstellung von Agar-Agar dienen, sind: Gracilaria confervoïdes und G. lichenoïdes, Campyloeophora hypneoïdes, Ceramium rubrum.
Ferner werden als ein Agar liefernd angegeben: Gelidium corneum (HUDSON) LAMOUR. (G. capillaceum KTZ., Fucus corneus HUDS., Sphaerococcus corn. AG.); Gelidium cartilagineum GAILLON (Fucus cartilagineus L., Sphaerococc. cart. AG.); Gloeopeltis tenax (TURNER), J. AGARDH [Florideae — Cryptonemiales — Gloiosiphoniaceae]; Eucheuma spinosum (L.) J. AGARDH (Fucus spinosus L., Sphaerococcus spinos. AG.); Eucheuma gelatinae AG. (Sphaerococcus gelat. AG.). Eucheuma speciosum AG. (Gigartina speciosa SOND.).
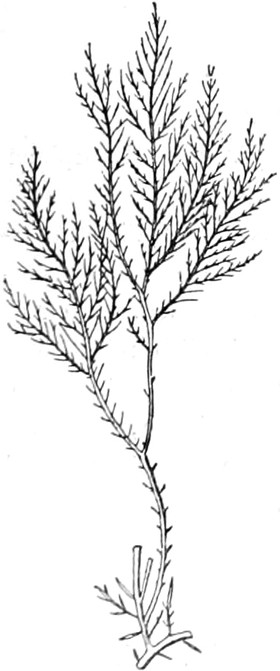
Fig. 105.
Gelidium Amansii.
[
Holmes
, Pharmaceut. Journal 1906.]
PAYEN betrachtete Gelidium corneum LAM. und Gracillaria lichenoides GR. als Stammpflanze des Agar. Ersteres wird sicher von den Chinesen gebraucht. (HANBURY fand es 1860 in einer Sammlung chinesischer Algen.) Doch werden nach HANBURY auch Laurencia papillosa GR., Laminaria saccharina LAMX., Porphyra vulg. AG. und Gracillaria (crassa?) sowie Eucheuma spinos. benutzt. MARCHAND, der die Streifen und vierkantigen Stücke (Würfelagar) mikroskopisch untersuchte, fand hierbei besonders Gelidium polycladum KÜTZ., unter dem sich aber zwei Algen verbergen. HOLMES bildet das japanische Gelidium polycladum SONDERS ab, das die Hauptmasse der Tengusa bildet. MARCHAND hält Gloiopeltis für den Hauptbestandteil in dem Würfelagar und Gelidium corneum var. acanthocladum (nach HOLMES var. pinnatum) für den Hauptbestandteil der schmalen Streifen und erwähnt auch eine Endocladia. MATSUMURA nennt: Gelidium corneum var. pinnatum, G. cartilagineum, G. repens, G. rigidum; OKAMURA beschreibt andere Arten. DAVIDSOHN, der in Japan lebte, teilte dann (1906) mit, daß hauptsächlich Gelidium Swansii, soll wohl heißen: Amansii (= Tengusa) gutes Kantén liefere, dann ein unbekanntes Gelidium (= Higekusa), schlanker als Tengusa und G. japonicum (= Onigusa); geringeres Kantén aber von dem an der Küste wachsenden G. subcostatum und den besonders als Beisatz benutzten Campyloeophora hypneoides (= Ego) komme. Beinahe so gut wie Tengusa bezeichnet er Acanthopeltis japonica (= Toriaschi — in Shikoku). Als Substitute und Beisätze werden auch benutzt: Gracillaria confervoides (= Ogo) und Ceramium Boydeni (= Igisu). HOLMES fand in Tengusa (1879): Gelidium elegans und G. polycladum (nicht G. subcostatum und divaricatum). DAVIDSOHN führt noch als Kantén liefernd an: Campyloeophora hypneoides, Gracillaria confervoides (wohl compressa), Sarcodia spec. ign. TUNMANN fand 1909 in den feinsten Sorten Agar Gracillaria confervoides.
Nach MARCHAND u. a. werden außer den Hauptalgen (s. oben) noch folgende zur Agar-Agar-Bereitung benutzt: Sphaerococcus compressus AG., Gloiopeltis coliformis, Gelidium capillaceum, sowie Arten von Streblonema, Scytosiphon, Sporanthus, Ceramium, Centroceras, Endocladia Nitophyllum, Polysiphonia, Gracillaria.
EUG. COLLIN fand in Agar Reste von Gelidium, Gloeopeltis, Gracillaria, Laurencia und Ceramium. Er bemerkt: «Il est probable que les Japonais utilisent pour la préparation toutes les algues de leur littoral, qui peuvent se transformer en gélose.»
Etym. Gelidium von gelare gefrieren, gerinnen, gelu (für Gelée schon im Wiener Dispensatorium) bedeutet Frost, Kälte. — Eucheuma von εὐ = wohl, schön, χεῦμα = Guß, Gußarbeit — Gloeopeltis von γλοία = Leim, Gallerte, πέλτη = Schildchen.
Die Gelidiaceen sind Rhodophyceen mit meist zartem verzweigtem, stielrundem Thallus mit deutlicher Fadenstruktur. Die Cystocarpien in Gestalt kleiner Anschwellungen bald endständig, bald intercalar an den letzten Auszweigungen des Thallus verteilt. Die Gelidieen haben Sprosse mit Zentralachse und eine dicht geschlossene Rinde. Die Zentralachse mit quergegliederter Scheitelzelle, Rindenfäden wirtelig angeordnet. Die vielgestaltigen Arten der Gattung Gelidium LAMOUROUX (Cornea STACKHOUSE) finden sich in sämtlichen wärmeren Meeren, oft weit verbreitet, Gelidium corneum (HUDSON) LAMOURX. z. B. im atlantischen, indischen und stillen Ozean. Gelidium ist fiederig seitlich verzweigt, von sehr dichtem und zähfestem Gefüge. Die Außenrinde ist kleinzellig, die Innenrinde längsfaserig durch zahlreiche, dicht zusammenschließende, dünne, längslaufende Fäden, welche die dünne Zentralachse fast vollständig verdecken und deren Gliederzellen sich vielfach querüber vertüpfeln. Bei Gelidium corneum findet sich ein ausgesprochenes Assimilationssystem in der Peripherie, das durch Sammelzellen mit dem weiter innen gelegenen Leitungssystem in Verbindung steht (Abbild. nach AGARDH in HABERLANDTS Anatomie S. 265).
Andere aus Algen hergestellte Gelatinen sind: Satsuma Funori, ein statt Gummi oder Leim von den Japanern und Chinesen als Klebemittel und zum Wäschestärken benutzte Gallerte, wird besonders aus Gloeopeltis tenax AG. hergestellt (s. weiter unten). Nori, ein japanisches Nahrungsmittel, wird aus Porphyra laciniata und coccinea dargestellt (SENFT).
Fig. 106.
Assimilationssystem von
Gelidium corneum
(Zellumina schwarz); darunter Sammelzellen, die mit dem Leitungsgewebe in Verbindung stehen.
[Nach
Agardh
aus
Willes
Algernes physiologiske Anatomi.]
Unter dem Namen «Sea weed jelly from China», «chinesische Pflanzengallerte», befinden sich in meiner Sammlung braune Würfel, die einen Caramelgeruch besitzen, süßlich fad schmecken und stark in Wasser quellen. Weitere Angaben in DRAGENDORFF, Heilpflanzen. Über Hay-Thao und Ly-chô vgl. VALENTA, Klebe- und Verdickungsmittel.
Lit. RENNIE, Essays on the nat. hist. and orig. of Peat moss. Edingb. 1810. — MEYER, De Fuco crispo. Berolin. 1835. — HERZER, De fuco crispo. Turici 1836. — SIGMOND and FARRE, Essay of the Ceylon Moss. London 1840. — LOVÉN, Om Geléers. Lund 1841. — ARCHER, Pharm. Journ. XIII, 312, 1854. — SIMMONDS, Ebenda 355. — (WIGGERS bespricht ARCHERS u. SIMMONDS Arbeit, Pharm. Jahresb. 1854, 10). — PAYEN, Compt. rend. 1859 u. 1860. — HANBURY, Science papers 1860. — MARCHAND, Note sur le Phycocolla ou gelatine végétale produite par les algues. Bull. soc. bot. France 27 (1879), 287 und 1880, 207. — C. A. J. A. OUDEMANS, Bijdrage tot de kennis van het Agar-Agar vlugtige opmerkingen omtrent Fucus amylaceus en Tjentjau. Haaxm. Tijds. 1856 (gute morpholog. u. anatom. Abbild. von Eucheuma spinos. u. Gracillaria lichenoides), auch Arch. Pharm. (2) 87, 283 (mit einer Tafel). — J. AGARDH, Spec. gen. et ordines algarum. Lund 1848–76. — SURINGAR, Algae japonicae. — DE TONI, Sylloge algarum omnium hucusque cognitarum. — Useful plants of Japan. — BORNET et THURET, Rec. d’observ. sur les alg. Paris 1876–1880. — OKAMURA, Neue japan. Florideen. Hedwigia 1894. — YATABE, Iconographia flor. japon. I. — MATSUMARA, Catal. of the plants of Japan. — HOLMES, The japanese sea weed industry (Pharm. Journ. 1906, 319 (besonders nach DAVIDSOHN, Wakayama Sea weed industr. Bull. Imper. Inst. IV, 2, 125; mit Abbild.) — DYMOCK, Vegetable Mater. med. — FILET, Plantkundig woordenboek. — HARTWICH in Realenzykl. d. ges. Pharm. I, 322. — KRASSER, Algen in WIESNER, Rohstoffe. — Die Gelidiaceen-Literatur bei SCHMITZ-HAUPTFLEISCH in ENGLER-PRANTL, Pflanzenfam. I, 2,340. — Abb. von Gracillaria: BENTLEY-TRIMEN, pl. 306. — PLANCHON-COLLIN, Drog. simpl. I, Fig. 10 u. 11 (auch anatom.).
Darstellung und Handelssorten. Die Auskunft, die HOLMES (1906) von einem Japaner erhielt, lautete dahin, daß die gereinigten Algen zu einem steifen Gelee gekocht werden, welches in Formen ausgegossen wird. Die erkaltete Masse wird, in Streifen geschnitten und, der Sonne einen Tag ausgesetzt, langsam trocknen gelassen. Der Hauptsitz der Agarfabrikation sind (nach DAVIDSOHN) die Distrikte von Osaka, Kioto, Nagano und Hiogo (besonders Hokaido, Wakayama, Miye, Shozuoka, Chiba), woselbst die Gewinnung namentlich während der Wintermonate betrieben wird. Die Pflanzen werden bereits vom Mai bis August gesammelt, während welcher Zeit sie am ergiebigsten sind. Die Hauptalge ist Gelidium «Swansii» (= G. Amansii), in Japan «Tengusa» genannt. Sie ist 10–20 cm lang und wird mittelst Haken und Schaufeln bzw. Schleppnetzen, auch durch Taucher aus dem Meere gesammelt, da die am Ufer wachsenden Algen von geringerem Werte sind. Es werden aber auch andere Arten (s. oben) zur Agarbereitung herangezogen; man setzt diese gewöhnlich dem Tengusa-Agar in größerem oder geringerem Maße zu (vgl. oben S. 306), wodurch die Qualität natürlich entsprechend beeinflußt wird. Die frisch gesammelten Algen werden von den Fischern am Strande sorgfältig getrocknet und hierbei zum Teil schon gebleicht; dies geschieht häufig (z. B. in der Provinz Izu) auf über den Boden erhöhten Bambusmatten. Das Produkt wandert nun in die «Kanten»-Fabriken, wo es in einer Art von steinernen Mörsern unter fortwährendem Wasserzusatz von anhaftenden Verunreinigungen, wie kleinen Muscheln und dergleichen, befreit wird. Dann wird es in Bambuskörbe in fließendes Wasser gestellt, um die letzten Unreinlichkeiten zu entfernen. Dann wird gebleicht, unter fleißigem Begießen und Wenden (zumal bei trockenem Wetter), wozu in der Regel 24 Stunden, bei ungünstiger Witterung aber auch mehrere Tage erforderlich sind. Das erste Bleichen beginnt im August oder September. Die Algen werden in dünner Schicht auf Bambusmatten ausgebreitet. Schließlich hängen die Algen zu Bündeln zusammen und diese Bündel werden verspeichert. Zur eigentlichen Herstellung des Agars, die vom November bis März erfolgt, weicht man die bearbeiteten Algen in Wasser ein, kocht sie über freiem Feuer (in 790 gallons haltenden Kesseln) oder behandelt sie mit Wasserdampf. Hierbei werden von den Fabriken bestimmte Gewichtsmengen Wasser und Algen (es kommen z. B. 165 engl. Pfund Algen auf 950–1000 Gallonen Wasser) eingehalten. Verwendet man geringwertigere Algen als Zusatz, so läßt man diese länger kochen, d. h. man gibt sie früher in den Kessel als die gute Sorte. Die ganze Masse bringt man zum Kochen, rührt innerhalb fünf bis sechs Stunden häufig um, gibt dann ein bestimmtes Quantum Essig oder Schwefelsäure zu und läßt nun wieder frisches Wasser zufließen. Etwa eine halbe Stunde nach dem erneuten Aufkochen ist der Prozeß beendigt. Die gelatineartige Flüssigkeit (japan.: Tokoroten) wird durch ein Hanf- oder Baumwollgewebe gepreßt (in Pressen oder durch Beschweren mit Gewichten) und zum Erkalten beiseite gestellt; nach etwa 18 Stunden ist sie zu einer Gallerte erstarrt. Die Preßrückstände werden wiederholt mit Wasser behandelt und auf die gleiche Weise nochmals auf Agar verarbeitet. Die Gallerte wird schließlich (im November bis Februar) der Nachtkälte ausgesetzt, wodurch die Masse nach etwa 18 Stunden bis drei Tagen völlig erstarrt und fest wird. Man läßt hierbei den filtrierten Schleim in genau wagerecht gestellte hölzerne Tröge laufen, die 61 cm lang, 30,5 cm breit und 7,5 cm tief und bisweilen in Kolonnen geteilt sind von 46 cm Länge, 3,5 cm Breite und 3,8 cm Tiefe. Dann erst zerschneidet, bzw. trocknet man sie unter wiederholtem Wenden an der Sonne und bringt die Droge in die handelsübliche Form. Das Schneiden in Längsstreifen geschieht mittelst eiserner «frames», das Trocknen auf Bambusmatten oder auf Böcken in Holzverschlägen unter Abhaltung des Staubes, bei kaltem Wetter (35° F.). Der größte Teil des japanischen Agar-Agar geht nach China und Hongkong und nur eine verhältnismäßig kleine Menge gelangt direkt nach Europa (DAVIDSOHN 1906, HOLMES).
Tafel VI a.
Agar-Agar-(Kanten-)Fabrik in Suwa Gori (Japan).
1. Die in dem hinten sichtbaren Bottich gekochte Masse wird auf die Filter geschöpft und die filtrierte Masse dann auf die rechts sichtbaren Rahmen gebracht. 2. Die gefüllten Rahmen werden ins Freie getragen. 3. Die starker Winterkälte ausgesetzten, in Reihen angeordneten Rahmen.
[Clichés Salle & Co. aus
Perrot-Gatin
, Les Algues marin. utiles 1911.]
⇒ GRÖSSERES BILD
Die Güte des Agar ist wohl nicht abhängig von den verwendeten Arten, sondern von der mehr oder weniger sorgfältigen Bereitungsweise. Es wird in folgenden Sorten hergestellt:
1. In c. 3–5 mm breiten, c. 35 cm langen, hyalinen oder grauweißlichen zerknitterten, meist zu Bündeln verschnürten Streifen. Selten erreichen diese, an die sog. Seele der Federkiele erinnernden, Streifen Fingerdicke und eine Länge von 50 cm.
2. In 2,5–4 cm dicken, c. 25–30 cm langen, gelblichweißen, leichten, vierkantigen, knitterig-blätterigen Stücken, die an den Kanten ebenfalls durchscheinend hyalin sind.
3. In c. 3 cm breiten und c. 30 cm dicken hyalinen Platten.
HANBURY hatte schon 1859 sowohl die vierkantigen Stücke, wie die dünnen Streifen in Händen (Science papers).
Der Großhandel unterscheidet Agar in Fäden — A.-Schnitzel — A.-Stangen und A. in Linealform. Fäden, Schnitzel, Stangen kommen in Packen von c. 90 kg in den Handel, Linealform in Kisten à 100 Stangen. Von Fäden, der besten und wichtigsten Sorte, unterscheidet GROSSMANN 1910 primaweiß 000, prima 00 und prima 0, eine minderwertige Sorte nennt er courant.
Der Export von Agar-Agar aus Japan betrug in den ersten 9 Monaten 1909: 1708353 Kin. 1904 exportierte Japan 10657 dz, 1906: 8377 dz. ⅓ der Ausfuhr geht nach China. Deutschland importierte 1906: 1064 dz, 1909: 919 dz.
Funori (sea weed glue s. oben S. 307) wird aus Gloiopeltis tenax (Yanayo-Funori) und G. coliformis und einigen anderen noch nicht bestimmten Algen dargestellt — das beste in Nagasaki und Kogoschima. Es wird auf dem Boden ausgebreitet, mit Händen und Füßen geknetet, in Körben gewaschen, dann zum Bleichen und Trocknen unter Bespritzen mit Wasser gleichmäßig ausgebreitet. Wenn ein zäher Saft auszutreten beginnt, wird kein Wasser mehr aufgespritzt. Man läßt dann eine Nacht liegen und trocknet. Das fertige Produkt ist also kein extrahierter Schleim, sondern wird von den verschleimten verschlungenen Thallusstücken gebildet. Es kommt in sheets (Blättern), die 4½ : 2½ Fuß lang sind, oder in Rollen in den Handel. Es löst sich fast ganz in kochendem Wasser (Pharm. Journ. 1906, Sept.). (Einige andere Algen, wie Chondrus spec. = tsuno-mata, Iridoea spec. = Ginantso, werden vorher in Wasser eingeweicht und erhitzt, dann mit Wasser bearbeitet und zum Trocknen ausgebreitet.)