I. Kohlehydratdrogen. (continued 8)
Reading edition
Lit. WIESNER, Rohstoffe. — WOENIG, Pflanz. d. alt. Ägypt. — THOMSON, Mumienbinden. Lieb. Ann. 69 (1849). — UNGER, Botan. Streifz. auf d. Geb. d. Kulturgesch. D. Pfl. d. alt. Ägypt. Sitzber. d. Wien. Akad. 1859. — WIESNER, D. mikrosk. Unters. d. Papiers usw. und KARABAČEK, Arab. Papier. Mitt. aus d. Samml. d. Papyr. Rainer. Wien 1887. — WAGLER, Artikel Baumwolle in PAULYS Realenzyklop. d. klass. Altert. — BRANDES, Über d. antik. Namen u. d. geogr. Verbreit. d. Baumwolle im Altertum. Leipzig 1866. — BLÜMNER, Technol. u. Terminologie d. Gewerbe u. Künste bei den Griechen u. Römern I (1875). — WITTMACK, Über d. Nutzpflanzen d. alten Peruaner. Compt. rend. du Congr. int. des American. Berlin 1888. — BRANDES, Über die antiken Namen u. d. geographische Verbreitung d. Baumwolle im Altertum. Jahresb. d. Freunde d. Erdkunde 1866. — DE CANDOLLE, L’origine des plant. cultiv. 4. Aufl. 1896, p. 323. — MASTERS in OLIVER, Flora of tropical Africa. — HOOKER, Flora of Brit. India. — BRETSCHNEIDER, Study and value of chinese botanical works. — C. RITTER, Die geograph. Verbreit. d. Baumwolle. — DE LASTEYRIE, Du Cotonnier. — SCHWEINFURTH und ASCHERSON, Aufzählung usw. — REYNIER, Economie des Arabes et des Juifs. — BRANDIS, Die Baumwolle im Altertum. 1866. — HEMSLEY, Biologia central.-american.
Die Samen (Sem. G. oder Sem. bombacis) wurden früher ähnlich wie Leinsamen in Abkochung als Schleim benutzt, jetzt meist auf Öl verarbeitet. In der Brandenburgischen Taxe 1574 (I, S. 816) steht Sem. Gossypii i. e. Coto vulgo v. Bombasum = Baumwollensat., und Sem. Bombacis in der Frankfurter Reformatio 1656 (I, S. 824) ist ebenfalls Sem. Gossypii.
Der früher als Ölsaat unbeachtet gebliebene oder (z. B. in China und Mittelasien) gemahlen nur als Viehfutter benutzte Same wurde zuerst 1783, aber erst seit 1852 in größerem Stil auf Öl verarbeitet. Jetzt bestehen zahlreiche große Baumwollsamenölfabriken bes. in Nordamerika (1894 dort bereits 252) und 1897 exportierte dies Land schon über 27 Mill. Gallonen Öl und verbrauchte noch mehr für den eigenen Bedarf als Ersatz des Olivenöls. Nächst Amerika exportiert Ägypten viel Baumwollsamen (1897 bereits 7½ Mill. hl).
Der amerikanische Baumwollsamen enthält 15–30, meist 20–25% Öl, der ägyptische im Mittel 25%. Beim Pressen erhält man 13–14%. Das Öl enthält neben Phytosterin Glyceride der Palmitin- und Ölsäure (besonders viel von letzterer, SLESSOR, Chem. Zentralbl. 1859, 140), der Linolsäure und Linolensäure; ferner geringe Mengen Oxyfettsäure, Cottonölsäure, einen aldehydartigen Körper und einen schwefelhaltigen, widerlich riechenden. Aus geschälten Samen bereitete Baumwollsamenpreßkuchen enthalten 43,3% Proteinstoffe, 14,3% Öl und 16,7% stickstoffreie Extraktivstoffe. Er ist also ein vorzügliches Futtermittel. (Mikroskopie bei PERROT, Bull. sc. pharm. 1902). Die Samen enthalten aber eine in Öl unlösliche (CORNEVIN), in kaltem Wasser lösliche giftige Substanz, die ein Alkaloid sein soll und die die Baumwollsamen-Preßkuchen zu einem nicht ganz ungefährlichen Futtermittel macht. Man hat denn auch Vergiftungen beobachtet (KOBERT, Intoxikationen). Der Same enthält neben Cholin und Betaïn Melitriose (RITTHAUSEN). In der Pharmazie wurde Baumwollsamenöl etwa seit 1880 als Ersatz des Olivenöls zuerst in Nordamerika benutzt. MARCHLEWSKI fand im Baumwollsamen krist. Gossypol (C13H12O2(OH)2?), das den Charakter einer Oxysäure besitzt (Chem. Zeit. 1898, 11). Die Cotyledonen der Samen von Goss. herbac. färben sich mit konz. HCl hellgrün, die Sekretbehälter an ihrem Innenrande dunkelgrün. Phloroglucin-Salzsäure färbt die Sekreträume violett. WINKEL führt die Reaktion auf Gossypol zurück (Apoth. Zeit. 1905, 211). Die Halphensche Reaktion ist eine Reaktion auf Baumwollsamenöl.
Lit. Cotton seed and its products U. S. Dep. of agric. Farmers Bull. No. 36 (1896). — Über das Baumwollsamenöl vgl. auch Pharm. Jahresber. 1908, 391 und WIEDEMANN, Dingl. polyt. Journ. 232, 190. — Weitere Lit. über die Baumwollsamen in BENTLEY-TRIMEN, Medicinal plants. — Bez. Analysen der Baumwollsamen vgl. Jahrb. d. Pharm. 1885, 95. — Gewinnung des Baumwollsamenöls: LEWIS, Diss. Philadelphia 1896 (Pharm. Zeit. 1896, 129). — MARCHLEWSKI (Gossypol). Journ. pr. Chem. 60 (2), 1899, 84. — HALPHEN, Journ. pharm. 1894 u. 1897. — SCHWEINITZ (Öl). Journ. Am. chem. soc. 1885. — CORNEVIN, Ann. agron. 22, 353 (Chem. Zentralbl. 1897, I, 515). — Das Anatomische oben S. 238.
Die Araber benutzten den Saft der Blätter medizinisch bei Koliken, die Samen bei Brustkrankheiten, das Öl bei Hauterkrankungen. Die Blätter von G. barbadense sollen die Milchsekretion befördern (ANDERSON, Jahrb. d. Pharm. 1881/82, 242).
In Amerika wird Cort. radicis gossypii auch vom Volke verwendet. Sie soll eine ähnliche Wirkung wie Secale cornutum besitzen. In Ostindien gilt sie als Diuretikum. STAEHLE fand in der Rinde c. 8% Harz, Kautschuk, Zucker, keinen Gerbstoff. DRUEDING fand in der Rinde ein rotes und ein gelbes Harz, Öl, Gummi, Zucker, Gerbstoff und Chlorophyll. HARTWICH und MORGAN erwähnen Sekretbehälter in ihr.
Lit. WILLIAM C. STAEHLE, Chem. and microscop. examinat. of Cotton Root Bark. Am. journ. pharm. 1875, 457. — CH. C. DRUEDING, Analysis of cotton root bark. Amer. Pharm. Journ. 1877, 49, p. 386. — HARTWICH, D. neuer. Arzneidrogen usw. S. 164. — MORGAN, Amer. Journ. 1898 (anatom. Beschr. d. Rinde). — Weitere Literatur über Rad. gossypii in BENTLEY and TRIMEN, Medicinal plants.
Über den Farbstoff der Blüten vgl. PERKIN, Journ. chem. Soc. 75 (1899) 825.
Ebenso wie Baumwolle und aus dem gleichen Grunde, d. h. wegen ihrer Aufsaugungsfähigkeit für das Blutserum, werden die Spreuhaare einiger tropischer Baumfarne benutzt, die also gewissermaßen als Paralleldrogen der Baumwolle betrachtet werden können.
Pili haemostatici.
Syn. Paleae cibotii s. stypticae, s. haemostaticae, Pili cibotii s. filicum, Farnhaare, blutstillende Spreuhaare, Farnkrautwolle, Teufelszwirn, Wundfarn, vegetabilische Schafwolle.
Im Handel finden sich von Farnhaaren folgende Sorten:
1. Penawar Djambi auch Penghawar Djambi (Pengawar Jambie, Pingh-war-har-Yamby, Pennober Jamby oder Pennawar dschambi; in China kau-tsib — Djambi liegt in Westsumatra) von Cibotium Barometz LINK (J. SM.) (Polypodium Baromez L., Aspidium Baromez WILLD.), und den nach SMITH wohl dazu zu ziehenden Cibotium glaucescens KZ., C. Cumingii KZ., C. assamicum HOOK. und C. Djambianum, sowie anderen Baumfarn Sumatras.
Cibotium Barometz heißt in Madur.: bar djambe oder bulu djambe, in Bali: djampi, javan.: penawar djambe, mal.: penawar djambi (DE CLERCQ). Man sollte also nicht Penghawar djambi, sondern Penawar djambi schreiben, wie dies übrigens die Pharm. austr. VIII tut (Penawar hitam ist Goniothalamus giganteus, P. merah: Ximenia americana, P. pahit: Eurycoma longifolia, P. putieh: Sonchus picta, P. radja: Sonchus insignis).
2. Paku kidang (Pakoe ist die holländ. Schreibweise) von Alsophila lurida BL., Balantium chrysotrichum HASSKARL (Dicksonia Blumei Mett., D. chrysotricha Moore, B. Magnificium Hook., Chnoophora tomentosa Bl.) u. and. Baumfarn Javas.
Die Alsophilaarten heißen im Sundanes. paku tihang, im Mal. paku tijang (DE CLERCQ). Man sollte also wohl den Namen so und nicht paku kidang schreiben. Kidang bedeutet Hirsch.
3. Pulu-Pulu von Cibotium glaucum HOOK. et ARN., C. Chamissoi KAULF., C. Menziesii HOOK. u. and. Baumfarn der Sandwichinseln und benachbarter Gebiete.
Ferner die Haare der südamerikanischen Lophosoria (Alsophila) affinis PRESL. (Alsophila pruinata KLFS.), der brasilianischen Alsophila armata PRSL. (Polypodium aculeatum RADDI) und des südmexikanischen Cibotium Schiedei CHAM. et SCHLECHT.
Systemat. Stellung. Balantium, Dicksonia, Cibotium: Pteridophytae, Filicales, Eufilicineae, Cyatheaceae, Dicksonieae.
Alsophila, Cyathea: Pteridophytae, Filicales, Eufilicineae, Cyatheaceae, Cyatheeae.
Cybotium Barometz ist über das ostasiatische Monsungebiet verbreitet: Hinterindien, Hongkong, Formosa, Java, Sumatra, die Unterart C. Cumingii auf den Philippinen heimisch; C. Menziesii auf allen Inseln der Sandwichgruppe (bei den Eingeborenen Hapu Ji oder Heii), ebenso C. glaucum und Chamissoi.
Die Wedelbasen und besonders der Vegetationspunkt zahlreicher tropischer Baumfarn (Fig. 90) sind dicht besetzt mit Spreuschuppen oder Spreuhaaren (paleae), die diesen Organen ein gelb-bräunliches, wolliges Ansehn verleihen. Es sind ziemlich lange, bei Cibotium 2–3, manchmal sogar 7 oder gar 9 cm Länge erreichende einreihige, bisweilen gedrehte und zusammengefallene seidigglänzende Haare, die aus Reihen gestreckter, bräunlichgelber, dünnwandiger Zellen bestehen. Oft ist besonders bei Paku kidang in ziemlicher Regelmäßigkeit jede zweite Zelle obliteriert. Die Spitze ist stumpf kegelig, die Querwände wellig gebogen. In Paku kidang findet man bisweilen echte Paleae, die Zellflächen bilden und Randzähne haben.
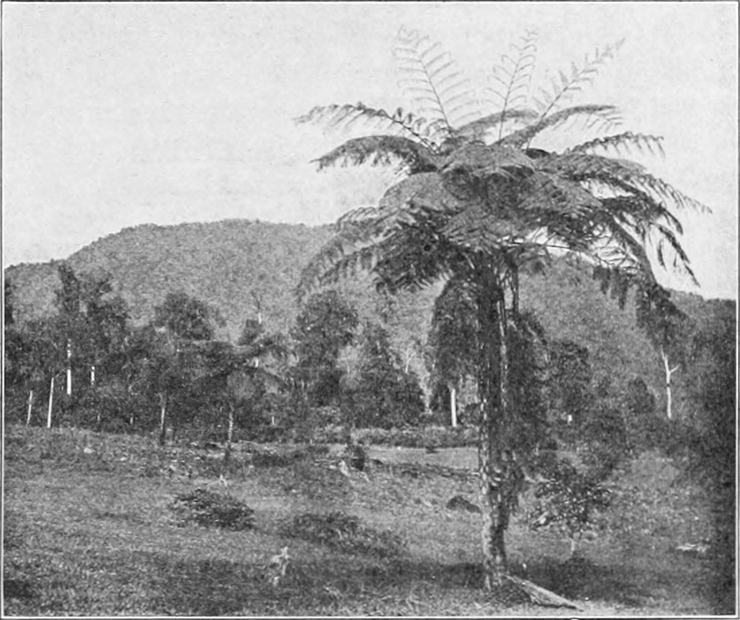
Fig. 90.
Baumfarn (
Alsophila
?) am Rande des Urwaldes am Gedeh (Mitteljava).
[
Tschirch
phot.]
Läßt man Jodschwefelsäure darauf einwirken, so tritt die Cuticula als scharf begrenztes Häutchen, der Zellinhalt als ein faltiger Sack hervor. Nur selten sah ich hierbei Blaugrünfärbung der Wand eintreten. VOGL gibt an, daß die Wand aus Zellulose bestehe. (WINTERSTEIN erhielt bei der Hydrolyse von Zellulosepräparaten aus Aspidium Filix mas und Athyrium Filix femina Traubenzucker und Mannose.) VOGL gibt (1864) an, daß die braungelbe Zellwand durch kochende Kalilauge unter starker Quellung entfärbt und dann in den inneren Schichten durch Jodschwefelsäure blau gefärbt wird.
Die Farbe der Droge ist bei den einzelnen Sorten etwas verschieden. Penawar Djambi ist am hellsten, braunrötlichgelb, Pulu-Pulu gelb-bräunlich, Paku kidang fast kaffeebraun. Pharm. austr. VIII nennt sie «seidenartig oder fast metallisch bronzeartig schimmernd». Kali färbt sie dunkler, die gelben Haare von Penawar z. B. rotbraun.
Die Breite der Haare beträgt c. 20–45 mik. bei Penawar Djambi, bei Pulu etwa 40–60, bei Paku kidang bis 100 oder 150 (TSCHIRCH), oder gar 300 mik. (VOGL). Übrigens ist die Breite sehr wechselnd. VOGL gibt für Penawar Djambi z. B. die größte Breite auf 100–140 mik. an. Bei Penawar Djambi sind die Haare lang und auf weite Strecken gerade, bei Pulu durcheinander gewirrt und fast stets bandartig zusammengefallen, bei Paku kidang entweder walzenrund oder obliteriert. VOGL fand in den Pulu-Haaren und auch bei Paku kidang Stärkekörner. Auch OUDEMANS und HARTWICH geben kleine Stärkekörner an. Ich fand solche nur in Paku kidang. Außerdem enthalten sie bisweilen eine vakuolige Masse als Wandbeleg, oder sind leer und führen Luft.
DE VRIJ fand «eene groote hoeveelheid Sal Ammoniak en een eigenaardig zuur» (bei OUDEMANS).
Penawar Djambi und Pulu-Pulu enthalten 1,53%, Paku kidang 6,74% Asche. Der Wassergehalt beträgt c. 12%.
Die Farnhaare werden seit 1851 hauptsächlich als Stopfmaterial für Kissen benutzt. Zu diesem Zwecke wurden noch 1908 große Mengen Pulu von den Sandwichinseln nach Nordamerika exportiert. Während 1851 die Ausfuhr nur 2479 Pfund betrug, stieg sie 1858 bereits auf über 300000 Pfund. 1845 machte man in England den Versuch, die Farnhaare mit Seide vermengt zu verweben.
Die hämostatischen Eigenschaften der Alsophila- und Cibotiumhaare sollen schon im Mittelalter bekannt gewesen sein (BARILLÉ). In Java und Sumatra werden sie seit Jahrhunderten (nach VOGL seit den ältesten Zeiten?) als Hämostatika benutzt. 1843 führte HASSKARL zuerst die mit den Spreuhaaren besetzten Wedelbasen zu diesem Zweck aus Java (Wälder am Gedeh) in Holland ein. Die Holländer machten sie also im XIX. Jahrh. von neuem in Europa bekannt und sie standen schon in der Pharmac. néerlandica vom Jahre 1856 — noch heute übrigens in der Pharmac. austr. VIII.
Die Verwendung der Farnhaare an Stelle der Charpie (daher: charpie fougère) beruht wohl, wie schon VINKE annahm, nur auf der Aufsaugefähigkeit derselben und der geringe, von FRANCHIE behauptete, von VAN BEMMELEN bestrittene Gehalt an Gerbstoff kommt kaum hierbei wesentlich in Betracht. Da Penawar Djambi niemals steril ist, ist vor der Anwendung zu warnen. Sterilisierte Baumwolle ist sicherer. Man sollte Penawar jedenfalls sterilisieren. Immerhin ist die Aufsaugefähigkeit der Farnhaare beträchtlich, da sie ein großes Lumen und eine nur dünne Wand besitzen, und alle Beobachter stimmen darin überein, daß sie ein vorzügliches Blutstillungsmittel sind. Neuerdings (1902) empfahl sie LUBET-BARBON als Hämostatikum bei Nasenoperationen. Vielleicht kommt die Wirkung weniger durch kapillare Aufsaugung, die ja, da die Haare gegliedert sind, also nur kurze Röhrchen in Aktion treten können, nur gering sein kann — als vielmehr dadurch zustande, daß die Zellen osmotisch das Blutserum aufsaugen und die Blutkörperchen durch Filtration abtrennen. Läßt man nämlich Blut zu den Haaren treten, so sammelt sich im Lumen Flüssigkeit, die Wand quillt und die Blutkörperchen lagern sich an der Außenseite der Zellen ab und verkleben hier. VOGL dachte sich (1866) die Wirkung anders, aber auch nicht durch Kapillarität bedingt. Er nimmt an, daß der Inhalt der Haare dem Blute Alkali, die Wand ihm Wasser entziehe und dadurch die Koagulation des Blutes zustande komme.
Daß auch die kurzen Paleae von Polypodium aureum blutstillend wirken, fand SEUBERT schon 1844.
Als Verfälschung wird Kapok angegeben (PROLLIUS).
Als Surrogat des Penawar empfiehlt GAWALOWSKI einen eigenartig behandelten Torfmull (Näheres in Zeitschr. d. Österr. Apoth. Ver. 1898, 671).
Eine Zeitlang benutzte man das Dekokt bei Hämorrhagien (MOLKENBOER, GAUPP). Es enthält nach BARILLÉ neben Harz und einem santelartig riechenden Körper einen Gerbstoff. VAN BEMMELEN bestreitet, daß Gerbstoff darin vorhanden ist. Er konnte mit dem Dekokt nicht die mindeste Wirkung auf das Blut konstatieren. Er fand in den Haaren: Pflanzenwachs, indifferentes und elektronegatives Harz, eine eisengrünende Säure, Quellsäure, Quellsalzsäure (?), Humussäure. Es fehlten: Stärke, Zucker, Alkaloide, Gerbsäure, Bitterstoff, ätherisches Öl.
In früheren Jahrhunderten kamen nicht die Haare, sondern das Stammende oder ein großer Blattwedel oder ein Stammstück mit einer Blattwedelbase als Agnus scythicus (Frutex tartareus, plantanimal, Vegetable lamb, im chines.: keu tsie, im cochin.: cau tieh) in den Handel. Man gab wohl auch durch Einstecken von Holz- oder Bambusstücken, die die Beine vorstellen sollten, dem Ganzen ein noch tierähnlicheres Ansehn. Aber nur ein sehr blödes Auge konnte dadurch sich täuschen lassen. In den Beschreibungen der Wunder Indiens spielte der Agnus scythicus immer eine Rolle. So weiß ODORICO DI PORTO MAGGIORE (I, S. 726) im XIV. Jahrh. viel über dies merkwürdige Pflanzentier zu berichten und ERASMUS FRANCISCI widmet ihm im Ost- und West-Indianischen Lustgarten eine weitläufige Beschreibung. Jetzt findet man es nur noch in Sammlungen. Ich besitze in meiner Sammlung ein hübsches skythisches Lamm, das sogar ein rotes Bändchen um den «Hals» trägt und dessen «Beine» aus Bambusstäbchen bestehen (das Exemplar des British Museums ist abgebildet in RYMSDYKS Museum britannicum, London 1791 tab. XV, Fig. 2). Barometz soll ein altrussischer Name für Lamm sein. Das ist möglich, denn heute noch heißt das Lamm im Russischen baraschek (baramek) von baran = Schaf. Der Name Barometz (Baramets, Boramez) wurde dem Agnus scythicus, wie es scheint, von CARDANUS gegeben (VOGL), der die Heimat des Gebildes — fälschlich — in die Gegend zwischen Wolga und Jaik verlegt. Das «Pflanzentier» war ein bewurzeltes Tier, das sich solange im Kreise um die Anheftungsstelle drehte, bis es alles Erreichbare verschlungen hatte. Dann mußte es sterben. Diese Fabel finden wir auch bei JOH. VON MAUDEVILLE. Eine andere Version lautete, daß sich im Lande Chadissa eine Frucht fände, die aufgeschnitten ein Lamm zeige, das mit der Frucht genossen werde. HARSDÖRFFER spricht daher von einem «Fruchttier». DEURSINGIO nennt es Agnus vegetabilis. Bei SCALIGER, BACO VON VERULAM, JOH. BAUHIN u. and. findet sich die Fabel dahin modifiziert, daß aus einem Samen, ähnlich jenem der Melone, ein Kraut hervorwachse, das die Gestalt eines jungen Lammes besitze. Sein Stengel stelle gleichsam die Nabelschnur dar (Abbild. nach KIRCHER in VALENTINIS Museum museorum) und seine reife Frucht enthalte unter dem wollenen Fließ ein süßes Fleisch. KÄMPFFER (I, S. 907) ist der schon von WORMIUS (1694) geäußerten Ansicht, daß es sich um das Fell unreifer, aus dem Mutterleibe herausgeschnittener Lämmer handele und in der Tat scheinen derartige Felle in Sammlungen als Barometz bezeichnet und mit dem eigentlichen Agnus scythicus verwechselt worden zu sein. Auch VALENTINI, der KÄMPFFERS Ansicht teilt, handelt das Gebilde beim Schaf, also unter den tierischen Objekten ab. GUILLAUME SALUSTE (in der franz. Übers. des CLUSIUS durch ANTOINE COLIN 1619) besang den Agnus scythicus in Versen (abgedr. bei HANBURY). Bereits Anfang des XVII. Jahrh. scheint er in Europa als Blutstillungsmittel in Benutzung gewesen zu sein (VOGL). Penawar Djambi war aber seit 150 Jahren aus dem Handel verschwunden. POMET erwähnt es nicht, ebensowenig LINNÉ (in seiner Mater. medica), SPIELMANN u. and. LINNÉ gab einer ihm aus China unter der Bezeichnung Baromez zugekommenen «wolligen Wurzel» den Namen Polypodium Baromez. Die Pflanze selbst sah zuerst LOUREIRO (I, S. 903). Er bestätigte, daß es sich um ein stark behaartes Polypodium handele. Aber noch ARCHER hielt die Haare für den Pappus einer Distel, bis ein 1852 von den Freundschaftsinseln nach Liverpool gelangtes Wedelstück die Sache endgültig aufklärte. Damals scheinen diese oder ähnliche Spreuhaare auch nach Deutschland gekommen zu sein, wo sie für eine Alge gehalten und als Conserva aureofulva KÜTZING beschrieben wurden.
1856 fanden sich im Londoner Handel die behaarten Stammstöcke und Blattbasen. Später kamen dann nur die Haare in den Handel.
Die genaue botanische Provenienz stellte dann SMITH fest.
Lit. KÄMPFFER, Amoenitates. — VALENTINI, Museum museorum, I, p. 458. — DIELS in ENGLER-PRANTL, Pflanzenfam. I, 4 (dort die Abbild. einer Alsophila). — HANBURY, On Penghawar Djambi a new styptic. (1856), Science papers, p. 120. — SEUBERT, Buchn. Repert. 86. — FRANCHIE, Vierteljahrschr. f. prakt. Pharm. 1854, 577. — VAN BEMMELEN, Chem. Unters. d. Pengh. Dj. Vierteljahrschr. f. prakt. Pharm. 1856, 321. — VOGL, Ges. d. Ärzte 1864, Über blutstillend wirkende Spreuhaare d. Farne, Wien. Med. Jahrb. 1865 (Jahresb. d. Pharm. 1865) und Zeitschr. d. Öster. Apoth. Ver. 3 (1865), 539 (Jahresber. d. Ph. 1866, 28), dort auch die histor. Notizen, sowie VOGL, Kommentar 1908. — VINKE, Ausführl. Ref. in Pharm. Jahresb. 1860, 15 und WITTSTEINS Vierteljahrschr. 9, 235 (dort auch die früheren Arbeiten besprochen). — PROLLIUS, Über die sog. palea cibotii. Pharm. Zentralh. 1884, 170. — GRESHOFF, Bull. pharm. de Lyon 1891. — BARILLÉ, Etudes des fibres textiles. Thèse Straßb. 1868 und Note sur le Penghawar Djambi et le Paku kidang Rep. de pharm. 1892, 49. — LUBET-BARBON, Arch. intern. de laryngologie 1902, No. 6. — OUDEMANS, Aanteekeningen, Rotterdam 1854 und Handleiding 1880. — WIESNER, Rohstoffe II, 466. — GAWALOWSKI, Ersatz für Penghawar. Zeitschr. d. Öster. Apoth. Ver. 1898, 671. — BRÜCKNER, Russ. Revue 21 (1882), 131 (Histor. — Nicht gesehen). — SMITH, Genera filicum 1841. — KUNZE in Schkuhrs Supplement t. 31. — MIQUEL, Analecta botan. indic. II, 36 und Sumatra 1862. — DODGE, Descript. Catal. of useful fiber plants etc. Washington 1897. — Abbild. d. Haare im Atlas zu OUDEMANS Aanteekeningen, Pl. B, bei PLANCHON-COLLIN, I, S. 47, HAGER-FISCHER-HARTWICH, Handb. d. pharm. Praxis I, S. 827, VOGL, Atlas t. 60, bei BARILLÉ a. a. O. und PROLLIUS a. a. O. — Unters. über d. Zellmembr. d. Farne und Moose: WINTERSTEIN, Zeitschr. phys. Chem. 21 (1895), 152.
Die Fasern.
Die Fasern gehören nicht zu den Arzneidrogen im engeren Sinne, sondern eigentlich zu den technischen Rohstoffen. Da sie aber auch für den Pharmakognosten wichtig sind, vielfach in der Pharmazie verwendet werden, und auch sonst in pharmakognostischen Handbüchern Erwähnung finden, mögen sie wenigstens kurz an dieser Stelle aufgeführt werden.
Die Pflanzenfasern sind nur selten (Lein) reine Zellulose. Die Jute z. B. enthält, wenn reif, 20–30 % Nicht-Zellulose (CROSS und BEVAN).
Die technisch verwerteten pflanzlichen Fasern.
Unter dem Namen «Fasern» versteht man jetzt sehr verschiedenartige Dinge. In erster Linie gehören hierher die Textilfasern (Flachs, Hanf, Jute, Baumwolle, Pflanzenseide, Chinagras, Nesselfaser usw.) und die zur Papierfabrikation verwendeten Papierfasern (außer Flachs, Hanf, Baumwolle noch Esparto, Strohfaser, Holzzellen, Bambusfaser, Hopfenfaser u. and.), dann sind aber auch noch, wenn man den Begriff ganz weit faßt, den Fasern zuzuzählen: die als Stopf- oder Polstermaterial verwendeten Pflanzendunen, édredon végétal, das vegetabilische Roßhaar, Holzwolle; die Bürstenmaterialien: Coir, Pite, Piassave, Esparto, Reisbesen; die Seilermaterialien: Hanf, neuseeländ. Flachs, Manilahanf, Jute, Pitahanf, Coir, Piassave; die zu gärtnerischen und anderen Zwecken verwendeten Bindematerialien: Lindenbast, Raphiabast, Ulmenbast, Cubabast; die Flechtmaterialien: spanisches Rohr, Bambus, Esparto, Pitafaser. Ihren morphologisch-anatomischen Charakter nach stellen diese Fasern sehr verschiedenartige Dinge dar: Pflanzenhaare (Baumwolle, Pflanzenseide, Pappelwolle, Wollgrasfaser), einzelne Bastfasern (Lein, Hanf, Jute, Chinagras), Bastfasergruppen (Manilahanf, neuseeländ. Flachs), subepidermale Baststreifen des Blattes (Raphiafaser), Bastfasern mit anhängenden anderen Elementen (Lindenbast), Gefäßbündel mit Bastbelegen (Aloëhanf, Sisalhanf, Sanseveria und Coirfaser), Gefäßbündelgruppen (Piassave, Kitoolfaser, crin végétal), ferner zerkleinertes (geschliffenes) Holz (Holzstoff, Holzzellulose), ganze Wurzeln (Reiswurzelfaser), ganze Blätter (Espartostroh), ja sogar ganze Pflanzen (Seegras).
Die tierischen Fasern zerfallen in Tierwollen und Haare (Schafwolle, Ziegenhaare, Angora Ziegenhaar, Tibetwolle, Kalb- und Kuhhaare, Kamelhaar, Kamelziegenwolle, Rehhaare, Schweinsborsten, Roßhaare u. and.) und Fäden (Seide). Sie sind sowohl morphologisch als mikrochemisch leicht von den pflanzlichen Haaren zu unterscheiden. Sie geben z. B. niemals auch nach vorheriger Behandlung mit SCHULZEscher Macerationsflüssigkeit die sog. Zellulosereaktion. Zur Unterscheidung der Tier- und Pflanzenfaser benutzt MOLISCH α-Naphthol (Jahresb. d. Pharm. 1886, 16).
Wenn wir von den ganzen Pflanzen (Seegras, Zostera marina und Carex brizoides) absehen, so können wir die Fasern einteilen:
1. in solche, die pflanzliche Haarbildungen darstellen und
2. solche, die entweder ausschließlich oder doch vorwiegend aus Bastfasern bestehen.
Bei der Untersuchung pflanzlicher Fasern ist in Betracht zu ziehen: 1. Die Form der Faserzellen: Basis, Lumen, Dicke der Wand, Art der Verdickung, Spitze, Form des Querschnittes, 2. Länge und Breite der Faserzellen; 3. Mikrochemisches Verhalten. Außer einer genauen mikroskopischen Feststellung der morphologischen Verhältnisse spielt also bei derartigen Untersuchungen das Messen mit dem Mikrometer, sowie die Einwirkung von Reagentien eine große Rolle. Bei der Anwendung der letzteren ist zu berücksichtigen, ob man eine rohe Faser oder eine verarbeitete vor sich hat. Denn durch zahlreiche Verarbeitungsprozesse (besonders das Bleichen) wird die Faser chemisch verändert oder erleidet durch aufgetragene Farbstoffe Farbenveränderungen. So wird bei den meisten Bleichprozessen das Lignin, wo es vorhanden war, aus der Membran entfernt, dieselbe reagiert also, auch wenn sie einer verholzten Zelle angehörte, wie Zellulose. An stark gefärbten Fasern lassen sich mikrochemische Reaktionen überhaupt nicht anstellen.
Dimensionsverhältnisse
Länge, Dicke, Verhältnis der Dicke zur Länge der wichtigsten Fasern — nach den Angaben von WIESNER, VÉTILLARD und VON HÖHNEL.
Name der Faser Länge mm Breite in mik (mmm) Verhältnis der Dicke zur Länge
Min. Max. Mittel Min. Max. Mittel
Lein von Linum usitatissimum 4 66 25–30 15 37 20–25 1200
Hanf von Cannabis sativa 5 55 15–25 16 50 22 1000
Hopfenfaser von Humulus Lupulins 4 19 10 12 26 16 620
Nesselfaser von Urtica dioica 4 55 25–30 20 70 50 550
Chinagras, Ramié von Boehmeria nivea 60 250 120 16 8 50 2400
Papiermaulbeerbaumfaser von Morus papyrifera — 10–25 6–15 — — 25–35 240–430
Sunnfaser von Crotalaria juncea 0,5 12 7–8 25(20) 50 30 260
Besenginster von Sarothamnus vulgaris 2 9 5–6 10 25 15 330
Pfriemenfaser von Spartium junceum 5 16 10 — — 20 500
Steinkleefaser von Melilotus alba 5 18 10 20 36 30 330
Gambohanf von Hibiscus cannabinus 2 6(12) 5 14 33(41) 21 240
Lindenbast von Tilia europaea, platyphyllos 1,25 5 2 14 20 16 125
Jute v. Corchorus capsularis, olitorius etc. 0,8 (4,1)5 2 20(16) 25(32) 22,5 90
Faser von Lagetta linteria 3 6 5 10 20 — 500
Bast von Salix alba, capraea u. a. — 3 2 17 30 22 90
Esparto oder Alfafaser von Stipa tenacissima 0,5 (1,9)3,5 1,5 7 18 12 125
Faser von Lygaeum Spartum 1,3 4,5 2,5 12 20 15 160
Ananasfaser von Ananassa sativa 3 9 5 4 8 6 830
Faser von Bromelia Karatas 2,5 10 5 20 32 24 210
Faser von Bromelia Pinguin 0,75 2,5 2 8 16 13 150
Neuseeländischer Flachs von Phormium tenax. 2,5 (5,6)15 8–10 8 20 16 550
Faser von Yucca sp. 0,5 6 3,5–4 10 20 — 170
Sanseveria-Faser v. Sanseveria zeylanica 1,5 6 3 15 26 20 150
Pite-Faser von Agave americana 1,5 4 2,5 20 32 24 100
Manilahanf von Musa textilis 3 12 6 16 32 24 250
Manilahanf von Musa paradisiaca, M. Sapientum — — 5 20 40 28 180
Faser von Phoenix dactylifera 2 6 3 16 24 20 150
Faser von Corypha umbraculifera 1,5 5 3 16 28 24 120
Faser von Elaëis guineensis 1,5 3,5 2,5 10 13 11 230
Faser von Raphia taetigera 1,5 3 2,5 12 20 16 160
Faser von Mauritia flexuosa 1 3 1,5 10 16 12 130
Coïr-Faser von Cocos nucifera 0,4 1 0,7 12 24 20 32
Tillandsia-Faser 0,2 0,5 — 6 15 — —
Piassava 0,3 0,9 — — — — —
Abelmoschus tetraphyllos, Bast 1 1,6 — 8 20 — —
Sida retusa, Bast 0,8 2,3 — 15 25 — —
Urena sinuata, Bast 1,1 3,2 — 9 24 — —
Baumwolle (Gossypium) 10 52 — 12 42 — —
Wollbaumwolle (Bombax) 10 30 — 19 42 — —
Wolle von Ochroma Lagopus 5 15 — 16 35 — —
Vegetabil. Seide v. Asclepias curassavica 10 30 — 20 44 — —
„ „ „ Calotropis gigantea 20 30 — 12 42 — —
„ „ „ Marsdenia 10 25 — 19 33 — —
„ „ „ Strophanthus 10 56 — 49 92 — —
„ „ „ Beaumontia 30 45 — 33 50 — —
Aloë perfoliata, Aloëhanf 1,3 3,7 — 15 24 — —
Calotropis gigantea, Bastfaser 7 30 — 18 25 — —
Bauhinia racemosa, Bast 1,5 4 u. mehr — 8 20 — —
Thespesia Lampas, Bast 0,92 4,7 — 12 21 — —
Cordia latifolia, Bast 1 1,6 — 15 17 — —
Sterculia villosa, Bast 1,5 3,5 — 17 25 — —
Holoptelea integrifolia, Bast 0,9 2,1 — 9 14 — —
Kydia calycina, Bast 1 2 — 16,8 24,2 — —
Lasiosyphon speciosus, Bast 0,42 5,1 — 8 29 — —
Sponia Wightii — 4 — — — — —
Pandanus odoratissimus 1 4,2 — — — — —
Pflanzliche Fasern, die von Haaren gebildet werden.
Die die Epidermis überziehende Cuticula breitet sich auch über die Anhangsorgane der Epidermis, die Haare. Es werden daher alle pflanzlichen Fasern, die von Haaren gebildet werden, von einer Cuticula bedeckt sein. Doch ist zu bemerken, daß durch die eigentümliche Behandlungsweise, die gewisse weiche Fasern bei ihrer Verarbeitungsweise erfahren, bisweilen die charakteristische Reaktion der Cuticula verloren geht. So zeigt z. B. gut gebleichter Baumwollenzwirn an den Fäden keine Cuticula. Ferner pflegen die Haare keine gegabelte Spitze, wie sie viele Bastzellen zeigen, zu haben, sind dagegen oft verzweigt und an der Basis abgebrochen — also nicht beiderseits zugespitzt, wie die Bastzellen (Ausnahme s. oben S. 239). Da jedoch von letzteren meist nur Fragmente zur Untersuchung kommen, so fällt dies nicht sehr ins Gewicht. Tüpfel besitzen die Haare nur an ihrer Basis, wo sie an das Gewebe angrenzen. Meist führen sie Luft, doch ist bei ihnen ausnahmslos ein zartes Plasmahäutchen, der Innenwand anliegend, nachzuweisen. Einzellig sind die Haare der Baumwolle, der Pflanzenseiden und Dunen, von einer einfachen Zellreihe wird die Pulufaser, von mehreren Reihen das Wollgras, die Typhafaser u. and. gebildet.
1. Baumwolle.
wurde schon oben S. 229 behandelt.
2. Pflanzendunen.
Als Pflanzendunen bezeichnet man die Samen und Fruchthaare der Wollbäume (Bombaceen). Es gehören hierher: Ceibawolle, édredon végétal, Bombaxwolle, Kapok, patte de lièvre. Sie dienen vorwiegend als Stopfmaterial. Folgende Arten kommen in Betracht: Bombax Ceiba E., B. heptaphyllum L., B. malabaricum ROXB., Cochlospermum Gossypium DC., Ochroma Lagopus SW., Chorisia speciosa ST. HIL., Eriodendron anfractuosum Dc. (Bombax pentandrum L.)
Die Pflanzendunen sind einzellige konische Haare mit bisweilen angeschwollener oder zusammengeschnürter Basis und rundem Querschnitt. Die Länge beträgt 1–3 cm. Die Wandung ist verholzt; die Cuticula glatt und dünn. Die wichtigsten Pflanzendunen sind: Die Bombaxhaare von Bombaxarten und Eriodendron anfractuosum, schwach verholzt, bisweilen 3 cm lang und 19–43 mik dick, an der Basis netzförmig verdickt. Die sog. patte de lièvre von Ochroma Lagopus, 0,5–1,5 cm lang, sehr dickwandig (5–8 mik), braun.
3. Pflanzenseiden.
Als Pflanzenseide bezeichnet man wegen ihres seidenartigen Glanzes die Samenhaare zahlreicher Asclepiadaceen und Apocyneen: Asclepias curassavica E., Calotropis gigantea R. BR., Marsdenia, Beaumontia grandiflora, Strophanthus hispidus u. and. Die Fäden der Pflanzenseiden sind 1–3 cm lang, steif, bis 80 mik dick. Die meist dünne verholzte Wandung zeigt im Querschnitte deutliche, mehr oder weniger nach innen vorspringende Längsleisten. Der Querschnitt des Haares ist rund.
4. Einheimische Wollhaare.
Als Stopfmaterial werden bisweilen die bis 3,5 mm langen, einzelligen, zylindrischen Samenhaare von Populus (Pappelwolle), die einreihigen mehrzelligen Perigonhaare der Früchte von Typha angustifolia (Rohrkolbenwolle), die 2–4 cm langen, mehrzelligen, zweischichtigen Haare des Haarschopfes der Früchtchen von unseren Eriophorumarten u. and. mehr verwendet.
Pflanzliche Bastfasern.
Die pflanzlichen Bastfasern werden fast ausnahmslos von Bastzellen oder Bastzellgruppen gebildet, denen in einigen Fällen noch andere Gewebselemente anhängen. Sehr selten werden auch Libriformzellen technisch verwertet. Die Bastzellen sind ringsum geschlossen und laufen beiderseits mehr oder weniger spitz zu oder sind an den Spitzen mit kleinen Seitenspitzchen versehen. Sie sind niemals verzweigt, meist sehr stark verdickt, von rundlichem oder polyedrischem, übrigens sehr charakteristisch variierendem Querschnitte. Die Tüpfel sind stets einfach, meist spaltenförmig. Bei den Bastzellen der Dicotylen sind die Tüpfel meist sehr undeutlich oder fehlen, bei denen der Monocotylen sind sie zahlreich. Einige Handelsfasern sind auch noch durch die von HÖHNEL richtig gedeuteten eigentümlichen Wandverschiebungen (Knoten, Querbruchstellen, Sprunglinien, plis de flexion) ausgezeichnet, die aber erst bei der Bearbeitung der Faser entstehen (SCHWENDENER), mit Chlorzinkjod sich dunkler färben, und den Fasern, die sie besitzen (Flachs, Lein, Ramieh, Nessel) ein sehr charakteristisches Ansehn geben. Sie fehlen der Jute, die nicht «gebrochen» wird. Das wichtigste Hilfsmittel der Diagnose ist der Querschnitt der Faser (VÉTILLARD, VON HÖHNEL). Niemals besitzen natürlich Bastfasern eine Cuticula (Unterschied von den Haaren). Der Inhalt besteht meist aus Luft, ein Plasmahäutchen ist fast ausnahmslos vorhanden, anderer Inhalt selten. Sie sind stets sehr lang. Die die Bastfasern da und dort begleitenden Gewebselemente sind Parenchymzellen, Kristallzellen, Gefäße, Tracheïden, Sklereïden, Siebröhren. Parenchymzellen finden sich bei den Rohbastfasern (z. B. Hanf, Flachs) fast ausnahmslos, denn da der Prozeß der Gewinnung der Faser auf einer mechanischen Herauslösung derselben aus den übrigen Geweben beruht, so ist es erklärlich, daß der (auf diese Weise) isolierten Faser noch Reste der begleitenden Gewebe anhängen. Dort wo die Bastfasern überhaupt nicht eigentlich isoliert werden, sondern samt dem umgebenden Gewebe verwendet werden (Manilahanf, Coir), sind sie natürlich stets deutlich nachzuweisen.
1. Leinfaser.
Die Flachsfaser wird von den zu, einen konzentrischen Panzer bildenden, Gruppen vereinigten Bastfasern der Stengelrinde des Lein, Linum usitatissimum L., gebildet, die nach dem Ausreißen und Riffeln der Stengel durch Rösten (Faulen in Wasser), Brechen (Zertrümmern und Herauslösen des spröden Holzkörpers), Hecheln (Abstreifen des begleitenden Rindenparenchyms und der Epidermis) und Schwingen von den übrigen Elementen des Stengels losgelöst werden. Der Rohflachs enthält daher stets noch Parenchym- und Epidermiszellen, ja sogar Holzelemente, die gereinigten besten Sorten bestehen dagegen nur aus Bastfasern.
Die Bastzellen des Lein sind gänzlich unverholzt, bestehen also aus reiner Zellulose, sehr stark und gleichmäßig verdickt und mit engem, fadenförmigem, plasmaerfülltem Lumen versehen. Die Enden sind sehr spitz und lang ausgezogen, die Wandung zeigt deutliche Verschiebungen (Sprunglinien), Poren sind kaum oder garnicht zu bemerken. Die Bastzellen des Lein sind entweder isoliert oder zu weniggliederigen Gruppen vereinigt. Der Querschnitt ist meist eckig-polygonal, eine Mittellamelle tritt bei Behandlung mit Schwefelsäure nicht deutlich hervor. Die Schichtung der Wand ist undeutlich. Bez. der Länge und Breite vgl. die Tabelle (S. 251). Das Geschichtliche des Lein wird bei den Schleimdrogen unter Linum besprochen werden.
2. Hanffaser.
Die Bastzellen des Hanf liegen in großer Zahl zu vielen Gruppen vereinigt in der Rinde des Stengels der Hanfpflanze, Cannabis sativa L. Sie sind schwach verholzt, nicht so gleichmäßig verdickt wie die des Lein, und mit zahlreichen Verschiebungen versehen. Das Lumen ist meist weit, verengert sich jedoch gegen die sehr dickwandige, stumpfe, bisweilen mit seitlichen Auszweigungen versehene, gegabelte Spitze linienförmig. Die Bastzellen stehen hier stets in Gruppen. Der Querschnitt der einzelnen Bastzelle ist abgerundet, oft tangential gestreckt, nicht eckig, das Lumen erscheint spaltenförmig oder polygonal und inhaltsleer, die Membran geschichtet. Bei Behandlung mit Jodschwefelsäure tritt die Mittellamelle scharf hervor, sowohl bei den Gruppen als auch — als anhängende Fetzen — bei der einzelnen Faser (VON HÖHNEL).
Nach HÖHNEL genügt der anatomische Befund der Faser selbst zur Unterscheidung der Lein- und Hanffaser. CRAMER zieht zur Diagnose noch die begleitenden Gewebselemente — Epidermis, Haare, Spaltöffnungen, Kristallzellen, Gerbstoffzellen — herbei. Dieselben dienen ihm als «Leiter». Haare, Kristall- und Gerbstoffzellen hat nur der Hanf. T. F. HANAUSEK fand (1908), daß sich der Plasmaschlauch der Hanffaser bei Behandeln mit Chromsäuregemisch anders verhält wie bei der Leinfaser. Während er bei letzterer oft gewunden (ähnlich wie bei der Baumwolle, Fig. 89) erscheint, ist er beim Hanf niemals wellenförmig verbogen, sondern gerade und tritt sehr plastisch hervor. R. KORN hält die Unterscheidung mit Cuoxam für besser (1910). Der Hanf ist dem semitisch-ägyptischen Kulturkreise fremd. (Im übrigen vgl. Fruct. cannabis.)
Der Hanffaser sehr ähnlich ist die:
3. Sunnfaser.
Dieselbe entstammt den rindenständigen Bastbündeln von Crotalaria juncea. Die Unterschiede beruhen in einem breiten, nicht spaltenförmigen, inhaltführenden Lumen und breiten verholzten äußeren Membranpartien, die sich von den inneren nicht verholzten sekundären Verdickungsschichten leicht ablösen (VON HÖHNEL).
4. Nesselfaser.
Die Bastfasern von Urtica dioica L. finden sich ebenfalls in der Stengelrinde. Sie sind unverholzt, unregelmäßig gebaut, die nicht sehr dicke Wandung ungleichmäßig gestreift. Das breite Lumen enthält oft Inhalt. Die Enden sind ausgezogen, abgerundet, meist löffelförmig erweitert, manchmal quer abgeschnitten oder gegabelt. Der Querschnitt der Bastzellen ist oval, abgeplattet, ja bandförmig, bisweilen mit einspringenden geschichteten Wandungen versehen (VON HÖHNEL).
5. Chinagras.
Das Chinagras oder die Ramié (Ramiehfaser) wird von den rindenständigen, einzelnen oder zu kleinen lockeren Bündeln vereinigten Bastzellen der Stengel von Boehmeria nivea (L.) HOOK. et ARN. gebildet. Die Bastzellen sind sehr ansehnlich (vgl. Tabelle S. 251), gänzlich unverholzt und zeigen häufig Verschiebungen. Das bisweilen Inhalt führende Lumen ist sehr breit, verschmälert sich aber gegen die Enden linienförmig; die Spitze ist dickwandig und abgerundet, der Querschnitt ist länglich oder flach zusammengedrückt, an den breiteren Stellen bandartig, die Wandung zeigt Schichtung. Sehr ähnlich ist die Roafaser von Pipturus argenteus.
6. Jute.
Die Jute wird von den rindenständigen, relativ kurzen, stets zu Gruppen vereinigten Bastzellen der Stengel von Corchorus capsularis L., C. olitorius L. u. and. Corchorusarten gebildet. Die Jutebastfasern sind stark verholzt, im Querschnitt isodiametrisch-polygonal, scharfkantig, mit schmaler Mittellamelle. Das Lumen ist, trotzdem die Wandung stark verdickt ist, relativ weit, rundlich oder oval, bei ein und derselben Zelle oft an bestimmten Stellen verengert, an den Enden dagegen weit. Letztere sind relativ dünnwandig, kegelförmig oder abgerundet, Verschiebungen fehlen, ebenso Streifung (VON HÖHNEL). Der Jute morphologisch sehr ähnlich ist der:
7. Gambohanf.
Derselbe stammt von den Stengeln von Hibiscus cannabinus u. and. Hibiscusarten. Von der Jute unterscheidet er sich durch eine breitere Mittellamelle, dickwandige, bisweilen schwach gegabelte Enden und eine bisweilen bis zum Verschwinden des Lumens vorschreitende partielle Verdickung der Wand. Der Jute ähnlich sind auch die Abelmoschusfaser (von Abelmoschus tetraphyllos) und die Urenafaser (von Urena sinuata).
Dicotylenfasern sind ferner: Die Hopfenfaser (v. Humulus Lupulus), die Papiermaulbeerbaumfaser (v. Broussonetia papyrifera), die Ginsterfaser (von Sarothamnus vulgaris), sowie die Daphnefaser (von Lagetta lintearia) — alle vier zur Papierfabrikation viel verwendet. Monocotylenfasern sind:
8. Neuseeländischer Flachs.
Derselbe wird vorwiegend gebildet von den Bastbelegen der Gefäßbündel der Blätter von Phormium tenax. Die vollständig verholzten Bastfasern sind gleichmäßig aber stark verdickt, das Lumen rund oder oval, leer, im Verlaufe der Fasern gleich breit. Die Enden sind scharf zugespitzt. Der Querschnitt ist rundlich oder polygonal mit abgerundeten Ecken. Mittellamelle undeutlich. Gefäße sind selten als Begleiter aufzufinden. Dem Aloëhanf und der Sanseveriafaser sehr ähnlich.
9. Manilahanf.
Unter dem Namen Manilahanf, Abaca, Plantainfibre, Siamhemp, white rope kommen die Bastfasern von Musa textilis NEES in den Handel. Dieselben sind stark verholzt, gleichmäßig aber nicht sehr erheblich verdickt, mit glatter Wand und großem, rundlichem, bisweilen inhaltführendem Lumen. Der Querschnitt der stets zu mehr oder weniger lockeren Gruppen vereinigten Bastfasern ist rundlich-polygonal. Mittellamelle undeutlich. Die Fasern werden von 30 mik langen verkieselten Zellen (Stegmata) begleitet.
10. Pitafaser.
Die Pitafaser, Pite, Sisal, Matamoros, Tampicohanf, besteht aus den Bastbelegen der Gefäßbündel der Blätter von Agave americana L. u. a. Agave-Arten. Die verholzten, stets zu Gruppen vereinigten Bastzellen (s. Tabelle) sind in der Mitte oft breiter, besitzen ein sehr weites (viel breiter als die Wand), polygonales Lumen und eine dünne Wand. Die breiten, stumpfen, selten gegabelten Enden sind stets verdickt. Die Mittellamelle ist undeutlich. Der Querschnitt der Bastzellen ist polygonal. Die Fasern werden begleitet von zahlreichen großen, spiraligen Gefäßen und Kristallzellen mit bis 0,5 mm langen Oxalatprismen oder deren Trümmern.
11. Aloëhanf.
Der Aloëhanf, Aloëfaser, Mauritiushanf sind gleichfalls Bastzellbündel von Blättern, und zwar von Aloëarten (bes. Aloë perfoliata). Die dünnen Bastzellen sind meist sehr stark verdickt, die Wandung (s. Tabelle) zeigt sehr steil linksschief gestellte Tüpfel, die Enden sind spitz oder kegelförmig, der Querschnitt ist polygonal, das Lumen rund, wenig breiter als die Wand. Die Faser wird von Gefäßen begleitet.
Sehr ähnlich gebaut ist die Sanseveriafaser von Sanseveria ceylanica.
12. Coirfaser.
Die braune Coirfaser entstammt der Fruchtschale der Cocosnuß (Cocos nucifera) und wird von den Gefäßbündeln derselben gebildet, die starke Sklerenchymbelege besitzen und von Stegmata begleitet sind.
Monokotylenfasern sind ferner: Ananasfaser, Silkgras, pine-apple fibre von Ananasa sativa. Yuccafaser von Yucca gloriosa. Alfafaser, Esparto von Stipa tenacissima und Ligaeum Spartum (das ganze Blatt). Pandanusfaser von Pandanus odoratissimus (Bastbündel der Blätter). Tillandsiafaser, vegetabilisches Roßhaar von Tillandsia usneoides (Bastbündel der Stengel). Palmenfasern und zwar: Piassave, Piassaba, Monkeygras von Attalea funifera MART. (Bahia-Piassave) und Leopoldinia Piacaba WALL. (nach T. F. HANAUSEK Paragras, Para-Piass.) (Bastbündel aus den Battscheiden). Palmettofaser, orin végetal, orin d’Afrique, von Chamaerops humilis (geschlitzte Blätter). Dattelpalmenfaser von Phoenix dactylifera (Blätter). Talipotfaser von Corypha umbraculifera. Raphiabast, Raphiastroh von Raphia taedigera (subepidermale Bastbelege der Blätter und Blattstiele). Kitool, Siamfaser von Caryota urens u. and. m.
Analytische Tabellen zur mikroskopischen Bestimmung der Fasern teilte HÖHNEL (a. a. O. und Beitr. zur techn. Rohstofflehre. Dingl. Polytechn. Journ. 1884, S. 251 u. 273) mit.
Ich verweise auf diese und bemerke nur, daß er folgende Gruppen bildet:
Fasern, die durch Jodschwefelsäure blau, violett oder grünlich gefärbt werden. Dikotyle Bastfasern und Baumwolle — ohne Gefäße (Flachs, Hanf, Sunn, Chinagras, Roafaser von Pipturus argenteus). Monokotyle Fasern, mit Gefäßen, ohne Verschiebungen (Alfa [Esparto] und Ananasfaser).
Fasern, die durch Jodschwefelsäure gelb gefärbt werden. Dikotyle Fasern, ohne Gefäße, Lumen mit Verengerungen (Jute, Abelmoschusfaser, Gambohanf, Urenafaser). Monokotyle Fasern, mit Gefäßen, Lumen keine Verengerungen (Neuseeländ. Flachs, Manilahanf [oft ohne Gefäße], Sanseveriafaser, Aloëhanf von Aloë perfoliata, Pitahanf, Yuccafaser von Yucca gloriosa).
Zur Papierfabrikation werden verwendet (bez. der Einzelheiten vgl. VON HÖHNEL, WIESNER, T. F. HANAUSEK): Lein, Hanf, Baumwolle, Weizen-, Roggen-, Hafer-, Reis-, Maisstroh, Esparto, Bambusrohr, Jute, Papiermaulbeerbaumfaser und Holzstoff (bes. das geschliffene Holz von Coniferen). Die Alten bedienten sich zum Beschreiben der Tempelwände (Ägypten), der Tontafeln (Assyrien), der Wachs- und Holztafeln (Rom), der Tierhäute (Pergament, verbessert in Pergamon II. Jahrh. n. Chr., verdrängte vom IV. Jahrh. an die Charta, dann wichtigster Schreibstoff des Mittelalters), des Leders, monokotyler Blätter (Bambus [China], Palmen [Indien, dort auch heute noch üblich]), einiger Rinden (z. B. des Birkenperiderm bes. in Asien, in Kaschmir bis ins XVI. Jahrh.), dann der Lindenbaststreifen (Rom) und des Papyrus (Charta: in dünne Blätter geschnittenes Mark der Papyrusstaude, die [zu dritt] übereinander gelegt und mit Stärkekleister miteinander verklebt wurden, bes. in Ägypten schon 2000 n. Chr. nachgewiesen, die ägyptische Papyrusfabrikation erlosch in der zweiten Hälfte des X. Jahrh., die sizilianische im XIII. Jahrh.), sowie später (in Asien) des Reispapier (Araliamark). Das gefilzte Papier ist eine Erfindung der Chinesen (c. 105 n. Chr., vgl. I, S. 523). Ein mittelalterliches Baumwollpapier gab es nicht (WIESNER, KARABACZEK, KOBERT). Die ältesten Papiere der Chinesen aus den ersten Jahrhunderten unserer Zeitrechnung bestanden aus den Fasern der Broussoneiia papyrifera L’HÉRIT (Papiermaulbeerbaum). Einige Jahrhunderte später traten dann auch noch das Chinagras (Ramie, Nesselfaser) von Boehmeria nivea HOOK. et ARN., die Hanffaser und die Faser von Edgeworthia papyrifera SALZM. dazu (WIESNER). Die in Turfan und Khotan kürzlich gefundenen Papiere aus dem VI-IX. Jahrh. bestanden vorwiegend aus Broussonetia- und Boehmeriafasern (KOBERT). Hadernpapier ist (nach KARABACZEK und WIESNER) eine Erfindung der Araber (VIII. oder IX. Jahrh.), wurde aber im X. Jahrh. von den Chinesen angenommen (oder selbständig erfunden?). Die Papiergewinnung kam c. 850 durch die Mauren nach Spanien. In Italien entstanden im XI., in Deutschland im XIV. Jahrh. Papiermühlen. Die ältesten europäischen Papiere sind gleich den arabischen stark mit Stärkekleister geleimt. Diese Leimungsart läßt sich bis zum Ende des XIII. bzw. Anfang des XIV. Jahrh. verfolgen. Dann folgt der Leim. Erst im XIX. Jahrh. begann die Harzleimung kombiniert mit Stärkeleimung. Bis zum XIV. Jahrh. sind die europäischen Papiere sehr langfaserig, nach und nach treten kurzfaserige an ihre Stelle, was auf eine tief eingreifende Umgestaltung des Papiererzeugungsverfahrens hinweist (WIESNER).
Lit. VON HOEHNEL, Die Mikroskopie d. technisch verwendeten Faserstoffe. 2. Aufl. 1905 (mit guten anatom. Abbild. und einem erschöpfenden Literaturverzeichnis). — WIESNER, Rohstoffe d. Pflanzenreiches. I. u. II. Aufl. 1873 und 1903. — VÉTILLARD, Etudes sur les fibres végétales textiles, employées dans l’industrie. Paris 1876. — T. F. HANAUSEK, Lehrb. d. techn. Mikroskopie. 1900. — HANAUSEK-WINTON, Microscopy of techn. prod. 1907. — SCHLESINGER, Mikrosk. Unters. d. Gespinstfas. Zürich 1873. — JOS. MOELLER, Pflanzen-Rohstoffe. Ber. über d. Weltausstell. in Paris. 1878, Wien. — FRANK-TSCHIRCH, Pflanzenphys. Wandtafeln. — HASSAK, Wandtafeln. — Abbild. auch in HAGER-FISCHER-HARTWICH, Handb. d. pharm. Praxis I, S. 1244 und den betr. Artikeln in Realenzyklop. d. Pharm. — FOCKE, Mikrosk. Unters. d. bekannt. Gespinstf. Arch. Pharm. 1886 (m. Abbild.). — BARILLÉ, Etudes des fibres textiles. Thèse Straßburg 1868. — CRAMER, Programm d. Zürich. Polytechnik. 1881; vgl. mein Refer. in Pharm. Zeit. 1881, Nr. 73. — VON HOEHNEL, Über den Einfluß des Rindendruckes. Pringsh. Jahrb. XV, S. 311. — SCHWENDENER, Über d. Verschiebung d. Bastfasern im Sinne VON HOEHNELS. Ber. d. d. Bot. Ges. 1894, 239. — T. F. HANAUSEK, Eine neue Methode zur Unterscheid. d. Flachs- und Hanffaser. Zeitschr. Farben-Industr. 1908. — GRESHOFF, De qualitatieve en quantitatieve bepaling van katoen naast kapok. Pharm. Weekbl. 1908. — J. AISSLINGER, Beiträge z. Kenntnis wenig bekannter Pflanzenfasern. Diss. Zürich 1907. — CROSS, BEVAN, KING and JOYNSON, Report on Indian fibres and fibrous substances. London 1887.
Über Papier vgl. VALENTA, Das Papier, seine Herstellung, Eigenschaften, Verwendung usw. Halle 1904, — CARL HOFMANN, Prakt. Handb. d. Papierfabrikat. I. B. 1891, II. B. 1897 Berlin. — HERZBERG, Papier-Prüfung. I. Aufl. 1888, II. Aufl. 1902 und D. heutige Stand d. Papierprüfung. Papier-Zeit. 1892. — MIERZINSKI, Handb. d. prakt. Papierfabrikation und Anleit. z. Unters. d. in d. Papierfabrik. vorhand. Rohprodukte in HARTLEBENS Chem. techn. Biblioth. B. 138–142. — HOYER, D. Papier, seine Beschaffenheit u. Prüf. 1882. — E. KIRCHNER, Das Papier I, Geschichte d. Papierindustrie 1897. — A. MEYER, Grundlagen 1901. — KOBERT, Über einige echte gefilzte Papiere des frühen Mittelalters. Zeitschr. Angew. Chem. 1910, 1249. — T. F. HANAUSEK in Real-Enzykl. d. ges. Pharm. VII und IX und Über einige besondere Papierbestandteile in Papierfabrikant 1910. — WIESNER, Die mikroskop. Unters. d. Papiers mit bes. Berücks. d. ältesten oriental. u. europäisch. Papiere. Mitt. aus d. Samml. d. Papyrus Erzherz. Rainer 1887. Die Geschichte des Papiers in WIESNER, Rohstoffe II, S. 429 — die bei der modernen Papierfabrikation benutzten Fasern sind ebenda aufgeführt und bei VON HOEHNEL a. a. O.
2) Reservezelluloso-Membranindrogen (Hemizellulosedrogen).
Die Membranen des Endosperms vieler Samen bestehen aus sog. Reservezellulose, die beim Keimen der Samen gelöst wird. Sie erweist sich verdünnten Säuren gegenüber als sehr verschieden resistent. Einige dieser Reservezellulosen lassen sich relativ leicht mit Säuren oder Enzymen hydrolysieren, wie die gemischten Mannane der Samenendosperme der Datteln, Palmkerne, Cocosnüsse, sowie von Ceratonia, Strychnos potatorum, Siliqua und Trigonella Foenum graecum, die sich als vornehmlich aus Galaktomannanen bestehend erwiesen, und die des Endosperms von Phytelephas macrocarpa, das viel Fruktomannan enthält — andere Mannosozellulosen, wie die der Kaffeebohnen, sind Säuren gegenüber sehr resistent. REISS fand bei der Hydrolyse Mannose (Seminose) liefernde Reservezellulose bei den Samen von Phytelephas, Phoenix dactylifera, Chamaerops humilis, Lodoicea Seychellarum, Elaëis guineensis, Allium Cepa, Asparagus, Strychnos nux vomica, Coffea arabica, Foeniculum officinale.
Während echte Zellulose nur Glukose liefert, liefert also die Reservezellulose, die sich leichter spalten läßt, andere Hexosen und oft Pentosen. Die bei der Hydrolyse mit verdünnten Mineralsäuren leicht in Lösung gehenden und dabei Galaktose, Mannose, Arabinose und Xylose liefernden Zellulosen nennt E. SCHULZE Hemizellulosen. Man nennt die Atomgruppen der Hemizellulosen, welche Galaktose oder Mannose, oder Arabinose oder Xylose liefern, Galaktane, Mannane, Arabane oder Xylane. Dementsprechend sind auch die Namen Pentosane und Hexosane gebildet (TOLLENS). Bei der Hydrolyse der Hemizellulosen entstehen die Monosen in so großen Mengen, daß sie zweifellos die Hauptprodukte der Umwandlung sind (E. SCHULZE). Hemizellulosen sind bei 300° in Glycerin löslich, aber nicht immer in Kupferoxydammoniak.
EULER teilt die Hemizellulosen in zwei Gruppen:
1. Reservezellulose in den Samen sowohl bei Monokotylen (Palmen, Liliaceen, Iridaceen), wie bei Dikotylen (Rubiaceen, Oleaceen, Convolvulaceen, Plantagineen, Primulaceen, Sapotaceen, Balsaminaceen, Tropaeolaceen, Ranunculaceen, Leguminosen, Myrtaceen). Die Lösung bei der Keimung bewirkt ein Enzym, die Cytase. Das Ferment führt die Hemizellulosen in verschiedene Zucker über, dadurch werden die aus Reservezellulose bestehenden Zellwände gelöst. Bis jetzt wurden bei der Aufspaltung der Reservezellulose erhalten: d-Mannose, dl-Galaktose, seltener d-Fruktose und d-Glukose. Sie enthalten also Galaktomannane. Die Membranen der Dattel z. B. liefern bei der Keimung durch den Einfluß der Enzyme Galaktose, d-Glukose und d-Mannose (GRÜSS). Die Endosperme der Palmensamen enthalten vorwiegend Mannane. Dattelsamen z. B. liefern fast ausschließlich d-Mannose, die Reiss Seminose nannte, wie viele Liliaceensamen, die Samen von Phytelephas macrocarpa Mannose und Fruktose. Die meisten Palmensamen geben auch Galaktose und enthalten daher Mannogalaktane, die sich auch bei Strychnos, Umbelliferen, Leguminosensamen (Ceratonia, s. d.) finden. Den Namen «Reservezellulose» habe ich 1888 (Angewandte Anatomie S. 171) eingeführt und dort auch ihre Rolle geschildert. Daß die Membranen einiger Samen beim Keimen gelöst werden, stellten zuerst SACHS (1862 bei der Dattel) und FRANK (1866 bei Tropaeolum) fest.
2. Hemizellulosen, die nicht den Charakter von Reservezellulose tragen, sondern Gerüstsubstanzen sind (Samenschalen usw.), enthalten vorwiegend Galaktane und Pentosane.
Über die Bildung und Auflösung der Reservezellulose äußert sich GRÜSS (1896) dahin, daß z. B. beim Dattelsamen zuerst Mannan gebildet wird und dann erst das Galaktan, und daß auch bei der Auflösung gelegentlich der Keimung der eine Bestandteil früher gelöst wird als der andere. GRÜSS meint, daß Galaktan und Araban durch die Enzyme nicht sofort in Galaktose und Arabinose, sondern zunächst in gummiartige Körper (Galaktin und Arabin) übergeführt werden (?) und auch als solche wandern können. Die Auflösung der Reservezellulosewände geschieht nach REISS (1889) entweder durch Abschmelzen von innen her (Phoenix, Chamaerops), durch intralamellare Lösung (Asparagus), durch intralamellare Verflüssigung (Foeniculum), durch intralamellare Lösung mit gleichzeitiger Korrosion (Allium, Cyclamen), durch Korrosion unter gleichzeitigem Abschmelzen (Iris) oder nur durch Korrosion (Tropaeolum, Impatiens). Auch in Rhizomen, Knollen und Zwiebeln finden sich Mannane als Reservezellulose.
Die zu 80% in den Sklerotien von Pachyma Cocos als Membranablagerung vorkommende Pachymose (WINTERSTEIN), die durch Jodschwefelsäure gelb wird und bei der Hydrolyse Glukose liefert, scheint ebenfalls ein Reservemembranin zu sein.
Lit. Zahlreiche Arbeiten von TOLLENS und seinen Mitarbeitern, sowie von E. SCHULZE und seinen Mitarbeitern (WINTERSTEIN, FRANKFURT, SCHELLENBERG, CASTORO, GODET u. and., Verzeichnis in Journ. f. Landwirtsch. 1904) und BOURQUELOT et HÉRISSEY und Mitarbeitern [Journ. ph. chim. 11 u. 12 (1900), Compt. rend. 130 (1900), usw.]. — E. SCHULZE, Über die zur Gruppe d. stickstofffreien Extraktstoffe gehörenden Pflanzenbestandt. Journ. f. Landwirtsch. 1904. — KLEIBER, Vers. z. Best. d. Geh. einiger Pflanz. u. Pflanzent. an Zellwandbestandt. Hemizellulosen u. Zellulose. Diss. Zürich. 1900. — SACHS, Sitzungsber. d. Wien. Akad. 1859. — TSCHIRCH, Angewandte Pflanzenanatomie. 1888. — GODFRIN, Ann. sc. nat. (6), 19, 1. — REISS, Über die Natur der Reservezellulose usw. Landw. Jahrb. 1889 u. Ber. d. d. chem. Ges. 22. 609. Ber. d. d. bot. Ges. 1889. — GREEN, Phil. Transact. London 178 (1887), 38. — BROWN u. MORRIS, Journ. chem. soc. 1890, 458. — ELFERT, Auflösungsvers. d. sekund. Zellm. d. Samen. Bibl. bot. 30, 1894. — GRÜSS, Lös. u. Bild. der aus Hemizellulose bestehenden Zellwände u. ihre Bezieh. z. Gummosis. Bibl. botan. 39, 1896 u. Bot. Zentralbl. 70. — M. GORET, Et. chim. et physiol. de quelqu. album. cornés de Graines de Légumineuses Thèse. Paris 1901. — E. SCHULZE, Ber. d. d. chem. Ges. 24, 2277. — SCHELLENBERG, Ber. d. d. bot. Ges. 1904, 9 und 1905. — CZAPEK, Biochemie (dort auch die Liste der Familien, bei deren Samen Reservezellulose vorkommt). — Zusammenfassung: E. SCHULZE u. CH. GODET, Unters. über d. in den Pflanzensamen enthalt. Kohlenhydrate. Zeitschr. phys. Chem. 61 (1909), 279.
Steinnuß.
Vegetabilisches Elfenbein (= Phyt-elephas) — corozo, morphil végétal, ivoire végétal (franz.) — yvory nut (engl.) — tagua, cabeza de negro (port.).
Die Stammpflanze der Steinnüsse ist Phytelephas marcocarpa RUIZ et PAVON (Syst. veg. 1798), dann wohl auch: Ph. microcarpa RUIZ et PAV. und einige andere Arten (Ph. Ruizii, Ph. Pavonii u. and.). Der Kew Index führt 15 Arten auf. DRUDE sagt: wenigstens drei.
Systemat. Stellung. Palmae-Phytelephantinae (Palmae anomalae). ROBERT BROWN stellt Phytelephas zu den Pandaneen, KUNTH zu den Typhinen, MARTIUS bildete aus ihnen eine besondere Familie: Phytelephantaceae (Phytelephasieae BRONGNIART).
Beschreibung. Die Phytelephasarten finden sich im tropischen Südamerika zwischen dem 9° n. B. und 8° s. B., sowie 70–79° w. L., an den Ufern der Ströme und Bäche, an der Küste und in der Bergregion. Ph. macrocarpa bildet einen bis 2 m hohen Stamm; Ph. microcarpa ist stammlos. Die Palme ist diklin-diöcisch. Der Fruchtkolben besteht aus sechs oder mehr aneinander gedrückten, beerenartigen Einzelfrüchten (Syncarpium), die außen hartholzige Protuberanzen zeigen. Jede Frucht hat 4–6 Fächer und ebensoviel Samen. Der Same ist von einer harten, bei den einzelnen Sorten verschiedenfarbigen, oft schwarzbraunen, aber häufig mit einer lehmfarbigen, abreibbaren Schicht (Mesocarprest) bedeckten Steinschale (Endocarp) umgeben, in der ein Keimdeckel sichtbar ist. Bricht man die sehr spröde Schale auf, so sieht man auf der braunen Samenschale ein grobes Netzwerk (Raphenetz). Sägt man den Samen der Länge nach durch, so findet man am einen Ende, etwas seitlich von dem Nabel, in einer konischen, durch einen Deckel geschlossenen Höhlung den kleinen Keimling. Die Hauptmasse des Samens besteht aus dem mehr oder weniger rein-weißen, steinharten Endosperm, das im Innern einen groben Längsspalt oder eine gestreckte Höhlung zeigt, die besonders bei den großen Colon- und Guajaquil-, weniger, bei den kleinen Savanilla- und Tumaco-Sorten hervortritt und die Verwertung der Steinnüsse zur Knopffabrikation sehr beeinträchtigt. Das Endocarp zeigt in der schwarzen Zone Palissadensklereïden, die Kieselkörper enthalten (MOLISCH). Dann folgt eine Zone kleiner Sklereïden und die innerste Schicht besteht aus braunen Inhalt führenden Faserzellen. Die bisweilen abgescheuerte, oben aufsitzende Deckschicht (Mesocarprest) besteht aus netzig verdicktem, luftführendem Parenchym (T. F. HANAUSEK). Die Samenschale besteht aus verschieden langen und verschieden orientierten gestreckten Sklereïden mit braunem Inhalt (Abbild. bei VOGL). Das Endosperm ist steinhart. Seine Zellen sind außerordentlich stark verdickt und zeigen große Porenkanäle, die sich an der Trennungsplatte keulig erweitern. Die Trennungsplatte ist von feinen Plasmafäden durchzogen, die eine offene Kommunikation der Zellen hervorrufen (aggregierte Verbindungen), aber auch die ungetüpfelte Membran ist von feinen Plasmafäden durchzogen (solitäre Verbindungen, Abbild. bei KOHL, Ber. d. d. bot. Ges. 1900, Taf. X). Die primäre Membran sowie die Schichtung der sekundären treten erst beim Behandeln mit Kali hervor. Die Wand wird durch Jod-Schwefelsäure blau. Im Lumen sieht man beim Präparieren in Öl große Aleuronkörner.
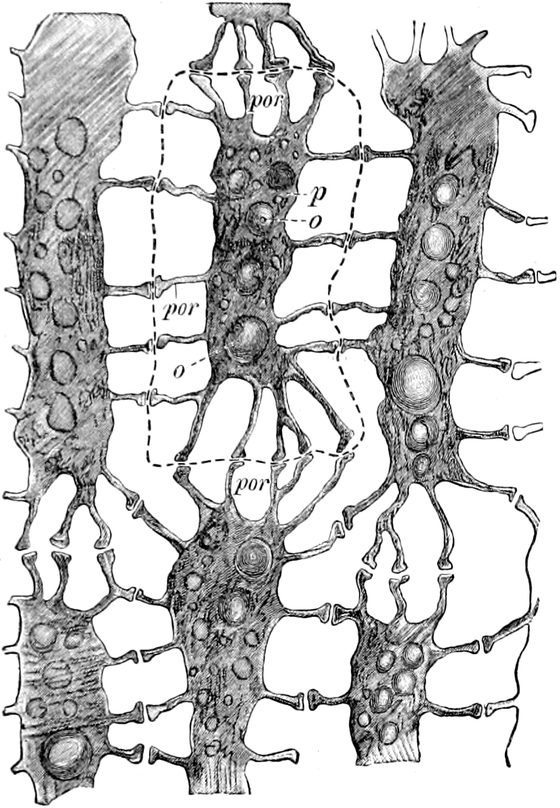
Fig. 91.
Zellen aus dem Endosperm der Samen von
Phytelephas macrocarpa
.
[Aus
Tschirch
, Angewandte Anatomie.]
Chemie. REISS fand in der Steinnuß 11,04 Wasser, 3,1–4,2 Proteïn, 1,51 Fett, durch heißes Wasser extrahierbar (exkl. Zucker) 7,5, Dextrose 0,49, Zellulose 74–75, Asche 1,3%. Bei der Hydrolyse erhielt er einen neuen Zucker, den er Seminose nannte und den EMIL FISCHER dann mit der d-Mannose (Rechts-Mannose, vgl. S. 6) identifizierte, die er bei der Oxydation des Mannits neben Fruktose erhalten hatte. Er ist auch identisch mit der Isomannitose, die TOLLENS und GANS bei der Hydrolyse des Salepschleims erhielten, und wohl auch mit der Carubinose. Der Pentosan- (nach IVANOW Araban-)gehalt beträgt 1,29% der Trockensubstanz. Die Seminase der Leguminosensamen vermag die Reservezellulose im Phytelephas- (u. and. Palmen-)Samen nicht direkt zu spalten — wohl aber, wenigstens teilweise, nach 24stündigem Digerieren 60% Schwefelsäure. Die Samen von Phytelephas enthalten ein Fruktomannan, das auf einen Teil d-Fruktose (Lävulose) 20 Teile Mannose liefert. IVANOW fand Hemizellulosen (Hexosane und Pentosane) und zwar 2,16% Pentosane und 1,55% Methylpentosane, viel Mannosezellulose und den dritten Teil davon Dextrosezellulose (?). Die Wände bestehen jedenfalls vorwiegend aus Mannanen.
Mannane finden sich in der Reservezellulose der Samen der Dattel, von Ceratonia und Phytelephas, im Salepschleim, in Cichorium, Taraxacum und Helianthuswurzeln, in Oliven, Äpfeln, Bananen, Mandeln (STORER) — Galakto-Mannane in den Samen von Ceratonia, Foenum graecum, Phoenix canariensis, Strychnos potatorum, — Gluko-Mannane im Samen von Ruscus aculeatus — Frukto-Mannane (Manno-Fruktosan) in vegetabilischen Elfenbein. STORER betrachtet das Mannan als einen weitverbreiteten Reservestoff.
Das Endosperm von Phytelephas macrocarpa enthält 8,8% Wasser und 5,48% der Trockensubstanz Rohfaser, d. h. durch Schwefelsäure während einer Stunde nicht verzuckerbare Substanz (LIEBSCHER). Der Gesamtstickstoffgehalt beträgt nur 0,619% (bei der Erdnuß: 8,132%, STUTZER), davon unverdaulich 0,082%, der Rohproteïngehalt 7,31% (FORMENTI, beim Dattelsamen 4,4%, GEORGES). Nach LIEBSCHER soll in den Phytelephassamen ein Alkaloid, Phytelephantin, vorkommen. MÉHU gibt Zucker (in den frischen Samen Rohrzucker) als Bestandteil an und den Eiweißgehalt auf 1,165–1,51%. Die Asche beträgt bei Phytelephas 1,40 (1,70 HOLDEFLEISS), bei der Tahitinuß (s. d.) 2,62% (HARZ). Die Asche enthält 33,58% SiO2. Die Steinschale gibt 14,6% Asche, vorwiegend aus Kieselsäure bestehend (MÉHU). Nach HARZ besitzen die Samen von Phytelephas eine Härte von 2,6, die Tahitinuß (s. weiter hinten) von 2,82 (tierisches Elfenbein 2,8, Areca Catechu 2,3).
Handel. Die Steinnüsse bilden einen bedeutenden Exportartikel des Magdalenenstromgebietes. Die Steinnüsse werden besonders aus Guajaquil und Manta (Ecuador) via Magellan oder Colon in Säcken von 100 kg exportiert. Columbien liefert die Corozos de Savanille.
Handelssorten (nach JOS. MOELLER): Marcellino, walnußgroß, c. 23 g schwer. Panama, größer, c. 53 g. Tumaco, von San Lorenzo, von Kugelausschnittform, Gew. 70 g. Palmyra, Kern graubläulich. Carthagena, 50–55 g schwer, Steinschale dunkelschwarzbraun. Guajaquil, Steinschale lehmfarbig, c. 45 g schwer. Esmeralda, kaffeebraun, Kern gelblich oder bläulich-weiß, Gew. 80 g. Colon, Gew. 80 g. Amazonas, taubeneigroß, Gew. 35 g, Kern elfenbeinweiß. Savanilla in vier Sorten (vgl. Wiesners Rohstoffe II, 691).
Der Großhandel unterscheidet besonders zwischen Guajaquil mit kleinem Spalt, 1000 geschälte Samen gehen auf 95–100 kg, und Savanilla mit großem Spalt, 1000 auf 5,5–7,5 kg (PLANCHON). Meist werden sie in der Steinschale (en coque) versandt. Die eine Hälfte des europäischen Bedarfes importiert Hamburg, die andere Le Havre und Genua.
Hamburg importierte 1908 aus Ecuador (Guajaquil-Manta, Esmeraldas, Tumacos in Columbien) 87950 dz, aus Columbien (Savanilla, Cathagena, Panama und Colon) 30300 dz.
Anwendung. Die Steinnuß wird in Deutschland, z. B. in Schlesien, dann in Böhmen, Wien, Frankreich und Nordamerika auf Knöpfe verarbeitet. Sie läßt sich färben. Die gemahlenen Abfälle werden zur Fälschung von Gewürzen und Kaffeesurrogaten benutzt. Gemahlene Steinnuß ist 1907 auch als Verfälschung von Mehl (VOY, BERTARELLI), sowie auch als Verfälschungsmittel des Knochenmehles und Palmkernmehles beobachtet worden (HARZ) und 1909 als Beimischung des Pulvers der Sem. strychni (LOUIS PLANCHON und JUILLET). Der Vorschlag von LIEBSCHER (1885), sie auf Albumin für Färbereizwecke zu verarbeiten, scheint nicht befolgt worden zu sein. Sie geben ein gutes Ausgangsmaterial zur Darstellung von Mannose.
Lit. Abbild.: TSCHIRCH, Ind. Heil- und Nutzpfl. t. 102 und DRUDE in ENGLER-PRANTL, Pflanzenfam. II, 3, 89. — SEEMANN, Die Palmen (Deutsch von BOLLE). 2. Aufl. 1863. — T. F. HANAUSEK in WIESNER, Rohstoffe und Zeitschr. f. Nahrungsm. Hyg. u. Warenk. 1893, 197. — MORREN (cit. bei WIESNER, I. Aufl. S. 792. Erste anatom. Beschreibung). — JOS. MOELLER, Mitt. d. k. k. technol. Gewerbemus. Wien 1880. — KOHL, Ber. d. d. bot. Ges. 1900, 364. — LOUIS PLANCHON et A. JUILLET, Le Corozo, Bull. mens. de l’Acad. d. sc. et lettres. Montpellier 1909 und Encore le Corozo, Bull. de Pharm. de Sud-Est. 1910. — BERTARELLI, Zeitschr. Unters. Nahr. u. Genußm. 1907. — VOY, Journ. pharm. 1907. — MOLISCH, Die Kieselzellen in d. Steinschale der Steinnuß. Zentralorgan f. Warenk. und Technologie 1891, 103. — Anatom. Abbild. in PLANCHON-COLLIN, Drogues simples I, 141. — VOGL, Nahrungs- u. Genußm. S. 554. — HANAUSEK-WINTON, Microsc. of technical products p. 412. — Chem. Lit. s. oben S. 259. Ferner: IVANOW, Über die Kohlehydrate der Steinnußsamen, Journ. f. Landw. 1908, 217; Chem. Zeit. 1908, 32 Rep. 654. — Ältere Analysen: CONNELL, Journ. pr. Chem. 1844. — LOGES, Wochenbl. f. Schlesw.-Holst. 1886. — JOHNSON, Jahresber. f. Agrikulturchemie 1880, 413. — HOLDEFLEISS, Landwirt 1879, Nr. 39 und Zentr. Agr. Chem. 1880, 234. — Dann: REISS, Über d. Natur d. Reservezellulose u. über ihre Auflösungsweise bei d. Keimung d. Samen. Landw. Jahrb. 1889 und Über d. in d. Samen als Reservestoff abgelagerte Zellulose u. eine daraus erhaltene neue Zuckerart, die Seminose. Ber. d. chem. Ges. 22 (1889), 609. — EMIL FISCHER und HIRSCHBERGER, Ber. d. chem. Ges. 22 (1889), 365 u. 1155. — TOLLENS u. GANS, Ber. d. chem. Ges. 21, 2150. — STORER, Chem. Zentralbl. 1902, 2, 1155. — MEHU, Jahresb. d. Pharm. 1887, 114. — HARZ, Bot. Zentralbl. 18 (1884). — WOLFF, Aschenanalysen. — STUTZER, Zeitschr. phys. Chem. 11 (1887), 207. — FORMENTI, Chem. Zentralbl. 1902, II, 536. — LIEBSCHER, Journ. Landw. 33 (1885), 470. Bot. Jahresber. 1885, 84. — BAKER u. POPE, Proc. chem. soc. 16 (1900), 72. — LIÉNARD, Et. d. hydrates de carbone de réserv. d. quelqu. graines d. Palmiers. Thèse Paris 1903.
Unter dem Namen Tahiti- oder Fidschinüsse, Australische und Wassernüsse kommen, übrigens weder von Tahiti noch von anderen Freundschaftsinseln, sondern von den Karolinen und Salomonsinseln, seit 1876 zu dem gleichen Zwecke die ebenfalls steinharten Samen einer anderen Palme in den Handel, welche Palme WENDLAND, ohne sie zu kennen, Sagus amicarum, DINGLER Coelococcus carolinensis DINGL. nannte. WARBURG stellte dann fest, daß außer dieser Palme auch Coelococcus salomonensis WARB. Tahitinüsse liefert, und nach LOUIS PLANCHON kommen auch die Samen von C. vitiensis H. WENDL. in den Handel. Die Carolinennuß ist glatt und glänzend, die Salomonsnuß ist dunkelrotbraun und matt und zeigt zehn meridional verlaufende Wülste. Der Same von C. carolinensis ist 4–6 cm hoch und 5,5–8 cm breit, der Same von C. salomonensis 4,5–5 cm hoch und 5,5–7 cm breit, der Same von C. vitiensis 3 cm hoch und 4 cm breit (WARBURG).
Die Tahitinüsse sind die bisweilen über 200 g schweren kugeligen Samen der Pflanze, die namentlich dadurch ausgezeichnet sind, daß sie nach dem Durchsägen in der Längsrichtung becherartig erscheinen. Der Keimling liegt an der Außenseite mehr oder weniger exzentrisch. Die Keimhöhlung ist durch einen Deckel verschlossen. Der anatomische Bau des Endosperms der Tahiti-Steinnuß ist dem der Phytelephas-Steinnuß ähnlich, doch treten die Zellkonturen hier deutlich hervor und im Inhalt der Zellen finden sich prismatische Oxalatkristalle (HANAUSEK). Man kann aus den Tahitinüssen größere Objekte drechseln, als aus den amerikanischen Steinnüssen. Hamburg importierte 1907: 5000, 1908: 4150 dz australische Steinnüsse.
Lit. WENDLAND, Bonplandia 1862. — T. F. HANAUSEK in WIESNERS Rohstoffen. II. Aufl., Zeitschr. d. Öster. Apoth. Ver. 1880, 360 und Zur Anatomie d. Tahitinuß, Zeitschr. f. Nahrungsmittel-Unters. 1893, 197. — DINGLER, Bot. Zentralbl. 1887. — WARBURG, Verbreit., System. u. Verwert. d. polynes. Steinnußpalmen. Ber. d. d. bot. Ges. 1896, 133. — L. PLANCHON et JUILLET, Encore le Corozo, Bull. de Pharm. Sud-Est. 1910.
3) Lichenino-Membranindrogen (inkl. Amyloid-Membranine).
Durch Jod sich direkt blau färbende Membranine.
Der Name Amyloid wurde 1844 von VOGEL und SCHLEIDEN für die mit Jod sich direkt blau färbenden Membranen einiger Endosperme angewendet. Amyloid findet sich in den Cotyledonen der Samen von Hymenaea Courbaril, Tamarindus indica u. a. und in den Endospermen der Samen von Primulaceen, Tropaeolaceen, Linaceen, z. B. in Primula, Impatiens, Tropaeolum, Cyclamen, Linum u. and., und Paeonia. Amyloid liefert bei der Hydrolyse keine Mannose (REISS). Es läßt sich mit kochendem Wasser extrahieren. Es liefert Glukosen (Galaktose) und Pentosen. Es enthält reichlich ein Galaktoaraban (WINTERSTEIN). Auch ein in den Essigbakterien gefundenes Kohlehydrat gibt Amyloidreaktion (BEIJERINCK), sowie das Amylomycin einiger Hyphenwände. Bei längerer Berührung mit konz. Schwefelsäure (oder HCl) oder dreistündigem Kochen mit Wasser bei 20 Atmosphären Druck, geht Zellulose in Hydrozellulose über, die identisch sein soll mit dem Amyloid genannten Körper, den man erhält, wenn man Zellulose in 30 Teilen Schwefelsäure (4 H2SO4.1 H2O) löst und mit Wasser fällt, aber nicht mit dem in den Membranen einiger Pflanzensamen (Paeonia, Linum) vorkommenden Amyloid, mit dem es nur die Eigenschaft teilt sich mit Jod direkt blau zu färben, von dem es sich aber dadurch unterscheidet, daß Hydrozellulose bei der Hydrolyse glatt d-Glukose liefert, währenddem die die genannten Membranen bildenden Substanzen dabei Galaktose, Glukose und Xylose (keine Mannose) liefern, also zu den Hemizellulosen gehören.
Das Pergamentpapier, das ja durch Einwirkung von Schwefelsäure auf Zellulosepapier dargestellt wird, färbt sich mit Jod direkt blau.
Einen Amyloid genannten Körper (diffus und in Körnern) fand VIRCHOW in degenerierter Leber, Milz, Niere, Lunge, Gehirn. Es wird mit Jod oder Jod-Schwefelsäure blau, enthält aber Stickstoff (W. KÜHNE, C. SCHMIDT). Es scheint den Eiweißstoffen näher zu stehen als der Stärke (FRIEDREICH) oder gar nicht zu den Polysacchariden zu gehören. Auch sonst scheint es bei Tieren vorzukommen, wie die Lerpmanna (s. d.) zeigt.
Lit. VOGEL und SCHLEIDEN, Beitr. z. Botanik 1844, I, Poggend. Ann. 1839, Flora 1840. — FRANK, Journ. pr. Chem. 95, 479. — KABSCH, Pringsh. Jahrb. III. — NÄGELI, Botan. Mitteil. I und Stärkekörner. — TSCHIRCH, Anatomie S. 173. — HEINRICHER, Flora 1888, 163. — WINTERSTEIN, Zeitschr. phys. Chem. 17 (1892), 353, Ber. d. chem. Ges. 25 (1892), 1237. — Derselbe, Über das pflanzliche Amyloid. Zeitschr. phys. Chem. 17, 353. — REISS, Ber. d. chem. Ges. 24, 1842, Landw. Jahrb. 18, 761. — SCHULZE, Zeitschr. phys. Chem. 19, 38. — VIRCHOW, Arch. path. Anat. 11, 188.
Auch in dem Lichenin steckt ein sich mit Jod direkt blau färbender Körper. Wie die mikroskopische Untersuchung lehrt, gehört das Lichenin zu den Membraninen. Es bildet die Substanz der Hyphenwände gewisser Schichten des Flechtenthallus, besonders des isländischen Moos. Man gibt ihm gewöhnlich die Formel (C6H10O5)n. Das durch Jod sich gelb färbende Lichenin wird im Lich. islandicus begleitet von Dextrolichenin (Isolichenin, ERRERA, HOENIG, SCHUBERT). Nur dies reagiert mit blauer Farbe auf Jod (daher Flechten- oder Licheninstärke). VOGEL nannte dies «Moos-Amylum» Amyloid. Lichenin ist optisch inaktiv. Dextrolichenin dreht rechts. Das Lichenin läßt sich aus dem Lichen islandicus dadurch darstellen, daß man die mit Alkohol, Äther, schwacher Sodalösung und Salzsäure extrahierte Flechte, nach dem Auswaschen mit kaltem Wasser, mit Wasser auskocht. Die Lösung gesteht zu einer Gallerte, aus der sich durch Alkohol oder Ausfrierenlassen das Lichenin abscheiden läßt. Aus der wässrigen Mutterlauge kann das Dextrolichenin (s. oben) abgeschieden werden. Lichenin löst sich in Kupferoxydammon, Dextrolichenin nicht.
Das Lichenin (Flechtenstärke, Moosstärke, Stärkemembran) und das Isolichenin liefern bei der Hydrolyse d-Glukose (nach ESCOMBE auch d-Galaktose?).
Lit. BAUER, Journ. pr. Chem. II, 34. — STENBERG und KLASON, Ber. d. chem. Ges. 19, 2541. — HÖNIG und SCHUBERT, Monatsh. d. Chem. 8, 452. — ERRERA, Compt. rend. 101, 253. — NILSON, Chem. Zentralbl. 93b, 942. — ESCOMBE, Zeitschr. phys. Chem. 22. — VOGEL, Linnaea 15, 63. — TSCHIRCH, Artikel Flechtenstärke in Realenzyklop. d. Pharm. V, 366.
Wohl mit dem Lichenin identisch, jedenfalls mit ihm verwandt, ist die durch Jod sich blau färbende Substanz der Apothecien der Flechten. Mit dem Lichenin verwandt, aber wohl nicht damit identisch, sind die ebenfalls in kochendem Wasser löslichen Everniin (in Evernia Prunastri STÜDE) und das Usneïn (in Usnea barbata), die bei der Hydrolyse Glukose liefern. Usneïn dreht rechts und wird durch Jodschwefelsäure rotviolett.
Nach ULANDER und TOLLENS enthält die Cetrariagruppe Lichenine, die Cladoniagruppe ist frei davon, liefert also keine wasserlöslichen Membranine. Sie gibt bei der (schwierigen) Hydrolyse d-Mannose und d-Galaktose neben etwas Glukose, sowie Pentosen und Methylpentosen.
Lit. ULANDER und TOLLENS, Ber. d. d. chem. Ges. 39, 401. — STÜDE, Lieb. Ann. 131.
Lichen islandicus.
Syn. Fucus islandicus, Muscus catharticus, Isländisch Moos, Lungenmoos, Haideflechte, Kramperltee, Tartschenflechte — lichene ou mousse d’Islande (franz.) — iceland moss (engl.) — lichene islandico (ital.) — ijslandsmos (holl.) — islannin jäkälä (fin.) — izlandizuzmo (ung.) — λειχὴν ὁ ἰσλανδικός (n.-griech.).
Etym. Isländisch Moos, obwohl weder ein Moos noch aus Island exportiert (kommt aber in Island vor). Mos, mossa (mosi, mus) ist der skandinavische Ausdruck für alle laubigen Kryptogamen, nicht nur für die Moose (JENSSEN-TUSCH, Nordiske Plantenavne. Kopenhagen 1867).
Stammpflanze. Cetraria islandica ACHARIUS Method. 293 (Lichen islandicus L. [Flor. suec. 1085, Spec. pl. 1611], Physcia islandica P. DC., Parmelia islandica SPRENGEL, Lobaria islandica HOFFM.). Bisweilen werden var. crispa ACH. mit schmalen, verbogen-krausen Thalluslappen, var. subtubulosa FR. durch zusammengeneigte Thallusränder röhrig und var. platyna ACH. mit breitem, flachem Thallus unterschieden. Auch andere Varietäten sind bekannt.
Systemat. Stellung. Lichenes. Ascolichenes — Parmeliaceae.
Etym. Cetraria ist aus cetra, dem kleinen, leichten, runden Lederschild des römischen Fußvolkes, gebildet und spielt auf die runden schildförmigen Apothecien an.
Beschreibung. Cetraria islandica gehört zu den heteromeren, gymnocarpen Strauchflechten (Thamnoblasti). Es handelt sich hier um eine eigenartige Symbiose vom Charakter eines parasitären Konsortiums zwischen einem Discomyceten und einer Palmellacee (s. unten). Der krause, aufrechte, strauchige Thallus (Thallom, Lager, Laub) ist mittelst kurzer, fadenförmiger Rhizoiden (Rhizinen) am Boden befestigt. Er ist blattartig, vielfach gelappt, aufrecht bis aufsteigend (Fig. 92), beiderseits berindet und kahl, bis 10 cm hoch. Bisweilen sind mehrere Individuen miteinander verwachsen oder verklebt. Am Grunde ist der Thallus verschmälert, rinnenförmig oder fast röhrenförmig und dort oft rötlich gefärbt. Nach oben verbreitert er sich und ist dort wiederholt gabelig oder unregelmäßig gelappt. Im frischen Zustande ist der Thallus häutig-lederig, auf der dem Lichte zugewendeten Seite olivengrün, auf der anderen blaß grün-weißlich oder grau-weißlich mit weißen, oft grubigen Flecken. Getrocknet ist der Thallus knorpelig, oberseits grünlich-braun, unterseits hell bis weiß. Am Rande zeigt der Thallus zahlreiche lange, bisweilen gegabelte, im Querschnitt rundliche Fransen, die an ihrer Spitze je ein Spermogonium tragen, in dem sich zahlreiche, stäbchenförmige Spermatien befinden, die bisweilen durch die terminale Öffnung ausgetreten sind und sich dort bisweilen als ein kleines Häufchen angesammelt haben (Fig. 93). Apothecien finden sich in der Droge selten. Ich habe ganze Zentner von Isländisch Moos durchsucht ohne eins zu finden. (Die im Handel vorkommende Form Cetraria island. var. crispa ACH. ist stets unfruchtbar, KRASSER). Sie sitzen einzeln oder zu zweit am Ende der Thalluslappen, der Oberseite schief angewachsen. Sie messen bis 1 cm in der Breite, sind rundlich oder oval und schildförmig (daher Cetraria, s. oben), frisch grünbraun, trocken bisweilen kastanienbraun. Sie besitzen einen niedrigen, bisweilen gekerbten Rand.
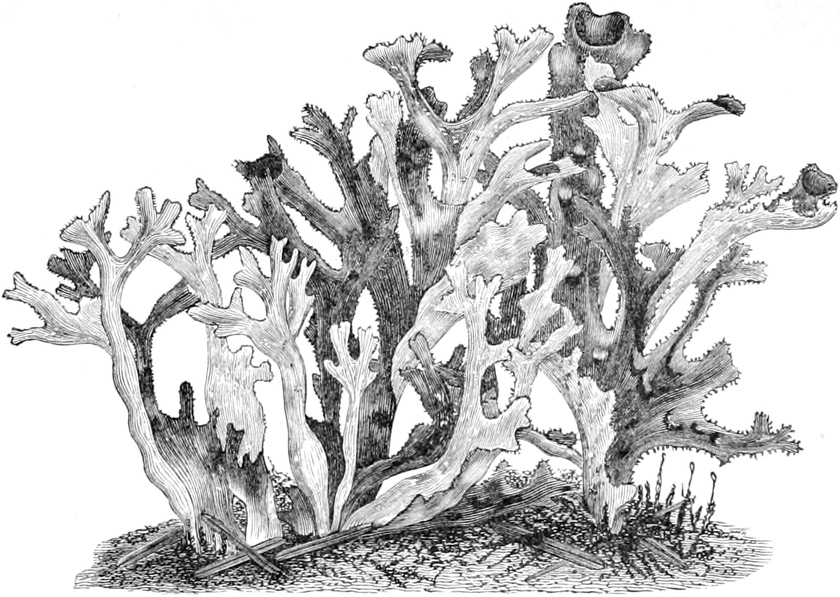
Fig. 92.
Cetraria islandica.
[Aus
Luerssen
, Med. pharm. Bot.]
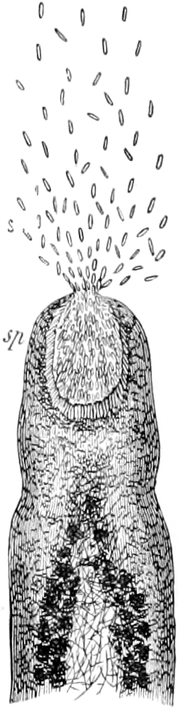
Fig. 93.
Cetraria islandica.
Spermogonien, die Spermatien entlassend.
[Aus
Luerssen
, Med. pharm. Bot.]
Lit. CRAMER, Diss. de Lichene Islandico Erlang. 1780. — OLAFSEN, Reise durch Island I, 85. — Abbild. bei NEES VON ESENBECK, Plant. med. t. 10, BERG-SCHMIDT, Atlas t. 159, BENTLEY-TRIMEN, Medic. plants t. 302 und LUERSSEN, Mediz. pharm. Bot. Ältere: PLENCK, Icon. t. 744, DILL, Hist. musc. t. 28, Fig. 111, Flor. Dan. t. 155 u. and.
Vorkommen. Die über die gemäßigte und kalte Zone beider Hemisphären verbreitete Flechte findet sich nur auf der Erde zwischen Moos, Gras und Heidekraut, im Norden in der Ebene, im gemäßigten Klima meist in lichten Gebirgswäldern. Häufig in Europa, Asien (Sibirien), im arktischen Amerika und weiter südlich bis Virginien und Nord-Carolina. In Skandinavien steigt sie bis zum Meeresstrande herab, in den Alpen bis 3260 m (Monte Rosa), ja über 3454 m (SCHRÖTER), also weit über die Baumgrenze empor.
Pathologie. Prof. ED. FISCHER berichtet über die Parasiten: Auf dem Thallus von Cetraria islandica können sich parasitische Ascomyceten ansiedeln, unter denen besonders der Discomycet Abrothallus Parmeliarum (SOMMERF.) NYL. zu nennen ist: Die Fruchtkörper desselben sind zuerst in die Marksubstanz der Flechte eingesenkt und bewirken blasige Wucherungen des Thallus, später brechen sie als rundliche schwarze Fruchtscheiben hervor (siehe H. REHM, Discomyceten in RABENHORSTS Kryptogamenflora. Pilze, Abt. III, p. 359). Außerdem wird (in SACCARDO Sylloge) auch der Discomycet Scutula oxyspora KARST. und der Pyrenomycet Sphaerulina cetraricola (NYL.) KARST. als auf Cetraria vorkommend angegeben.
Einsammlung und Handel. Die Flechte wird im Harz, Fichtelgebirge und Riesengebirge, in Niederösterreich, auf dem Schneeberg und der Rax, in den Voralpen (Kant. Bern und Luzern, I, S. 98), in Tirol, Frankreich, Skandinavien und Spanien, sowie in Nordamerika gesammelt. Island scheint nichts zu liefern, jedenfalls nicht regelmäßig zu verschiffen (WIGHT).
Lichen islandicus wird in gepreßten Ballen à 120 kg gehandelt.
Lit. WIGHT, Pharm. Journ. 17 (1887), 689. — Pharmacographia.
Anatomie. Der bis 0,5 mm dicke Thallus zeigt drei Schichten: die Randschicht, die Mittelschicht und die Markschicht. Die Randschicht besteht aus einem lückenlosen pseudoparenchymatischen Gewebe dicht miteinander verflochtener, dickwandiger, kurzer Hyphen (Paraplectenchym, LINDAU), deren Wände sich mit Jod nicht oder nur schwach blau färben. Die Mittelschicht besteht aus einer sehr verschieden dicken Schicht, vorwiegend parallel der Oberfläche gestreckter Hyphen mit dicker Wand und engem Lumen. Sie ist es in erster Linie, die sich mit Jod direkt blau färbt und beim Kochen mit Wasser sich löst bzw. in eine Gallerte übergeführt wird. Die Färbung mit Jod, die stets nur an den Wänden auftritt, bleibt auch bei alter Droge nur selten aus, wenn man den Schnitt in Jod-Jodkaliumlösung einlegt und dann mit Wasser auswäscht. Die Mittelschicht ist also die eigentümliche Licheninschicht. Die innerste oder Markschicht besteht aus locker verschlungenen Hyphen (Plectenchym, LINDAU), die reichlich Luft zwischen sich lassen, daher meist erst dann deutlich werden, wenn man zum Schnitte Alkohol zutreten läßt. Die Hyphenwände färben sich in dieser Schicht nicht mit Jod. Nur die äußersten Schichten zeigen bisweilen schwache Färbung. Zwischen den Hyphen dieser Markschicht liegen, meist der Mittelschicht genähert, die Gonidien, die Algenzellen des Flechtenthallus. Die c. 10–12 mik breiten, rundlichen, bisweilen in Teilung begriffenen Gonidienzellen sind bei der lebenden Flechte grün und enthalten ein fast hohlkugelförmiges Chromatophor, das ein Pyrenoid einschließt, bei der Droge sind sie bräunlichgrün. Sie sind der einzige chlorophyllhaltige Bestandteil der Flechte. Sie sind in größerer Zahl an der morphologischen Oberseite (Lichtseite) des Thallus zu finden, der demnach auch stärker gefärbt erscheint, doch finden sich auch der Unterseite (Schattenseite) genähert stets eine Anzahl Gonidien. Die Verteilung verleiht dem Cetrariathallus den Charakter eines heteromeren Flechtenthallus (bei den homöomeren sind die Gonidien über den ganzen Thallus verteilt). Die Gonidien gehören zu der Protococcaceen- (Palmellaceen-Gattung), Chlorococcum humicola (Cystococcus humicola NAEG.), die auch freilebend auf Baumstämmen und andere Flechten bildend bekannt ist. In den blasigen weißen Flecken, welche der Unterseite ein so charakteristisches Aussehn verleihen, finden sich luftreiche Wucherungen des Markes, die die Rindenschichten blasig hervorwölben und schließlich sogar aufsprengen, so daß das Mark da und dort zutage tritt. Da das hervortretende Hyphengewebe Gonidien mitnimmt, haben wir diese Bildungen als Soredien anzusehen. Die abgeschnürten Knäuel bilden die ungeschlechtliche Fortpflanzungsform der Flechte. (Es sind nicht Cetrarinablagerungen wie KNOP meinte.)
Die Spermogonien bilden ovale Höhlungen an der Spitze der Randfransen. Sie sind ausgekleidet mit einer dichten Schicht gegliederter schwach verästelter zarter Hyphen, die in Basidien auslaufen, welche die stäbchenförmigen, c. 6 mik langen Spermatien (s. oben) abschnüren. Früher hielt man die Spermatien für die männlichen Organe. Jetzt weiß man nur, daß ihnen diese Bedeutung nicht zukommt. Vielleicht sind die Spermogonien funktionslos gewordene (männliche?) Organe. Die Spermatien vermögen auszutreiben und ein neues Mycel zu erzeugen.
Die Apothecien zeigen ein stark entwickeltes Hymenium mit zahlreichen Ascis. Der flechtenbildende Pilz, der sich zu einer bestimmten Gattung nicht stellen läßt, ist ein Discomycet. Die keulenförmigen Asci mit 6–8 ovalen Ascosporen werden von den Paraphysen überragt. Die Wand der Asci, bisweilen auch die der Hyphen des Hypotheciums, färben sich mit Jod blau (enthalten also auch Lichenin), die Paraphysen gelb oder gelbbräunlich.
Lit. PAYEN, Compt. rend. 1837, 145. — PEREIRA, Heilmittellehre. — VOGEL a. a. O. — KNOP, Chem. Zentralbl. 1872, 173. — LUERSSEN, Med. pharm. Botan. I, 223. Abbild. auch in OUDEMANS Atlas 1854 (erste anatom. Abbild.), BERG, Anatom. Atlas t. II, 4 und HÉRAIL-BONNET, Manipulat. t. 36. — STAHL, Beitr. z. Entwicklungsgesch. d. Flechten. Leipzig 1877. — TSCHIRCH, Artikel Lichen islandicus in Realenzykl. d. Pharmac.
Chemie. Isländisch Moos enthält eine gallertebildende Substanz und einen Bitterstoff, der sich durch Extraktion mit schwachen Alkalicarbonatlösungen entfernen läßt (L. i. ab amaritate liberatus). «Man hat es daher in der Hand, aus der Droge ein Amarum purum, ein Amarum mucilaginosum oder (aus der entbitterten Droge) ein Nutriens mucilaginosum darzustellen» (JOS. MOELLER, 1906).
Den Gallerte bildenden Stoff isolierte bereits EBELING (1779), CRAMER (1780) und PROUST, sowie PFAFF (1808) in unreiner Form und PROUST erkannte schon seine Eigenart. PFAFF bemerkt, daß der Cetrariaschleim, von dem er 33% erhielt, am meisten mit der Stärke übereinkomme, obwohl er die Jodreaktion noch nicht kennen konnte, da das Jod noch gar nicht entdeckt war. JOHN scheint ihn 1821 für Inulin gehalten zu haben. BERZELIUS, der (neben 36,2% stärkeartigem Skelett) 44,6% Gummi und Moosstärke (laf stärkelse) erhielt, nannte den Stoff, der die Gallerte liefert, zunächst Moosstärke, dann Lichenin oder Flechtenstärke. PAYEN glaubte mit Jod sich bläuende Körnchen zu sehen, aber bereits PEREIRA fand keine stärkeähnliche Körner und so scheint bereits ihm klar gewesen zu sein, daß es hier die Membran ist, die sich mit Jod bläut. Lichenin ist nur in den Membranen enthalten (TSCHIRCH), nicht, wie KNOP und SCHNEDERMANN meinten, im Inhalt und zwischen den Hyphen. Die Wände der Hyphen von Cetraria islandica scheinen kein Chitin zu enthalten (ESCOMBE, WESTER). HOPPE SEYLER und TANRET hatten es als darin vorkommend angegeben. TH. BERG fand 1872, daß das Lichenin aus zwei Isomeren der Formel C6H10O5 besteht. Er nennt den in kalten Wasser löslichen, aber nicht durch kaltes Wasser aus der Flechte ausziehbaren jodbläuenden Stoff, der 10–11,5% der Flechte beträgt, «wahre Flechtenstärke» — jetzt (nach FLÜCKIGERS Vorschlag) als Dextrolichenin bezeichnet —, den in kaltem Wasser unlöslichen, durch Jod nicht gebläuten, der 20% ausmacht, Lichenin. Der letztere scheidet sich aus der Abkochung der Flechte beim Erkalten als Gallerte ab. BERG gab beiden die Formel (C6H10O5)n. Die Hydrolyse mit Mineralsäuren lieferte ihm aus beiden gärungsfähigen Zucker. Diastatische Fermente verzuckern nicht. Lichenin (s. oben, S. 263) bildet eine Gallerte, aber keinen bindenden Kleister. Es liefert mit Salpetersäure Oxalsäure (nicht Schleimsäure). Das durch Auskochen mit Wasser, Fällen mit Alkohol usw. gewonnene Lichenin ist optisch inaktiv und liefert bei der Hydrolyse mit verd. Schwefelsäure d-Glukose. Die Kohlehydrate der Cetraria islandica betragen im ganzen 80%. Sie bestehen etwa zur Hälfte aus dem in heißem Wasser löslichen Lichenin. Die in Wasser unlöslichen Kohlehydrate sind Hemizellulosen, die Dextrane, Mannane und Galaktane und etwa 3% Pentosane, sowie ein wenig echte Zellulose (?) enthalten. Werden nämlich die wasserlöslichen Kohlehydrate durch Auskochen entfernt, so bleibt ein Rückstand, der bei der Hydrolyse viel d-Glukose und daneben weniger d-Mannose und d-Galaktose und etwas Pentosen und Methylpentosen liefert (ULANDER und TOLLENS). Selbst durch anhaltendes Kochen ist man aber nicht imstande, dem unlöslichen Rückstande ganz die Eigenschaft zu nehmen, sich durch Jod blau zu färben (PEREIRA). Entbittertes, d. h. von der Cetrarsäure befreites Isländ. Moos, enthält: N-freie Extraktivstoffe, Lichenin usw. 79,2%, N-haltige Stoffe 2,81%, Rohfett 0,4%, Rohfaser 4,6%, Asche 6,99% (HANSTEEN). Zu Brot verbacken wurden 50% der Flechtenkohlehydrate vom Körper resorbiert und verbrannt. POULSON empfiehlt es als Nahrungsmittel für Diabetiker. Es gelingt, bis 70% gallertbildende Stoffe aus Cetraria islandica durch Auskochen darzustellen, die im Verhältnis 1 : 20 eine steife Gallerte bilden (FLÜCKIGER).
Bereits JOHN erkannte (1821) den Bitterstoff als einen eigentümlichen Bestandteil. BERZELIUS und besonders RIGATELLI stellten die Substanz dann dar und einige Zeit spielte «RIGATELLIS Salz» (unreines Cetrarin) als Fiebermittel in Italien eine Rolle. HERBERGER isolierte den Bitterstoff (1837) in reinerer Form und nannte ihn Cetrarin (Moosbitter). Diese Forscher benutzten Alkohol als Extraktionsmittel. Doch wußte bereits BERZELIUS, daß man Isländisch Moos mit Pottasche entbittern kann. SCHNEDERMANN und KNOP, die sich ebenso wie PAYEN der Alkalien zur Extraktion bedienten, erhielten (1845) das Cetrarin kristallinisch in Form intensiv bitter schmeckender Nadeln, erkannten seine Säurenatur und nannten es Cetrarsäure. Sie gaben ihm die Formel C34H34O15 (resp. C18H16O8); HILGER und BUCHNER formulierten C30H30O12. Cetrarsäure, nach SIMON: C20H18O9, ist zu etwa 2–3% (nach SIMON sicher) in der Flechte vorgebildet enthalten neben Fumarsäure (SIMON) und Protocetrarsäure (HESSE). Cetrarsäure reduziert Fehlingsche Lösung in der Wärme, löst sich sehr wenig in siedendem Wasser, leicht in Alkalien und Alkalikarbonaten. Auch die Salze schmecken sehr bitter. Wird die Lösung in alkoholischer Salzsäure einige Stunden gekocht, so färbt sie sich erst gelb, dann grünlich, rötlich fluoreszierend, violettrot und endlich blau (SIMON), eine sehr charakteristische Reaktion. Bei der Spaltung mit Natronlauge und Zinkstaub entsteht Orcin (Zopf) und 1,2-Dimethylphendiol-3,5 (SIMON):
Cetrarsäure ist nach Simon methoxylhaltig und enthält wohl neben einem Carbonyl ein Carboxyl und ein Hydroxyl, jedenfalls zwei durch Metalle vertretbare Wasserstoffatome. Sie ist vielleicht der Methyläther von HESSES Protocetrarsäure. HESSE betrachtete sie früher fälschlich als Triäthylprotocetrarsäure (C54H31O24(OC2H5)3). ZOPF und HESSE sind entgegen der oben vertretenen Auffassung der Ansicht, daß Cetrarsäure in der Flechte nicht vorgebildet ist, sondern erst aus der Fumar-Protocetrarsäure bei der Extraktion entsteht. Diese Ansicht teilt SIMON nicht. Die blaugrüne bis blaue Färbung durch Salzsäure-Alkohol (s. oben) kommt außer der Cetrarsäure auch anderen Flechtensäuren, wie der Protocetrarsäure, Ramalinsäure (wohl identisch mit Protocetrarsäure), Kullensissäure, Caprarsäure und Physodalsäure zu, die alle ebenfalls bitter schmecken (vgl. ZOPF, Die Flechtenstoffe). Auch Protocetrarsäure (C18H14O9 oder C19H16O9) und Fumarprotocetrarsäure (Cetrarsäure ZOPF = 2(C4H4O4). C54H42O27) werden als vorgebildete Bestandteile der Cetraria islandica angegeben (ZOPF, HESSE, SIMON).
Bereits BERZELIUS gab an, eine Lichensäure in der Flechte gefunden zu haben (an Kalk und Kali gebunden). Später strich er diese wieder und erklärte sie, als Fumarsäure gefunden wurde, mit dieser identisch. (PFAFFS Flechtensäure ist von DEMARÇAY und SCHRÖDER als Fumarsäure erkannt worden). Vielleicht hatte er aber die Lichesterinsäure in Händen, die zuerst von SCHNEDERMANN und KNOP in Kristallen in einer Ausbeute von 1% isoliert worden war. Sie gaben ihr die Formel C29H25O5 (STRECKER: C14H24O3, HILGER und BUCHNER: C43H76O13, O. HESSE: C17H28O4, später C18H30O5, noch später C18H30O4), die dann SINNHOLD in C19H32O4 umwandelte, welche Formel R. BÖHME adoptierte und in:
auflöste. Diese Lichesterinsäure soll aber in Cetraria islandica nicht vorgebildet sein (ZOPF, HESSE). ZOPF und O. HESSE isolierten nämlich als angeblich wahre Bestandteile Proto-α-Lichesterinsäure C18H30O5, F. 106–107 und Proto-Lichesterinsäure (C19H32O4 ZOPF oder C18H30O4 HESSE). Wohl isomer mit letzterer ist die oben erwähnte Lichesterinsäure, die aber, wie gesagt, in der Flechte nicht vorgebildet sein, sondern erst beim Kochen mit Alkohol aus der Protolichesterinsäure entstehen soll. Auch α-Lichesterinsäure (C18H30O5) soll in der Flechte nicht vorgebildet sein, sondern aus der Proto—Lichesterinsäure beim Kochen mit Alkohol entstehen. R. BÖHME ist jedoch der Ansicht, daß es nur eine Lichesterinsäure (F = 124–125°) gibt. Seine Lichesterinsäure gab beim Kochen mit Alkali Lichesterylsäure (SINNHOLD):
und beim Behandeln mit Jodwasserstoff und Reduktion λ-Iso-Stearinsäure (C18H36O2) und einen gesättigten Kohlenwasserstoff. HILGER und BUCHNER erhielten bei der Oxydation Caprinsäure. Ferner ist in einer Varietät der Cetraria islandica eine Paralichesterinsäure (C20H34O5) in sehr kleiner Menge gefunden worden (HESSE). Was HESSE als β- und γ-Lichesterinsäure beschrieb, muß (nach HESSE) gestrichen werden; ebenso Hesses Dilichesterinsäure. Cetraria islandica aus Vorarlberg enthielt 0,62% Proto-α-Lichesterinsäure; die Flechte aus Tirol ein Gemisch dieser Säure mit Protolichesterinsäure. Regelmäßig war bei Exemplaren verschiedenster Provenienz Cetrarsäure vorhanden. Cetraria islandica erzeugt Fumarprotocetrarsäure wie Protolichesterinsäure sowohl in Mitteldeutschland wie in Süddeutschland und den Alpen, auf Kalk sowohl wie auf Urgestein (ZOPF).
Ferner werden Oxalsäure und Weinsäure (?) angegeben (Pharmacographia). Bereits BERZELIUS fand Blattgrün in der Flechte. Obwohl KNOP und SCHNEDERMANN angeben, daß ihr Thallochlor vom Chlorophyll abweiche, ist es doch wohl nichts anderes. Die Unterschiede rühren von Verunreinigungen her. Mit gespanntem Wasserdampf destilliert gibt Cetraria islandica 0,051% ätherisches Öl, das beim Stehen Kristalle abscheidet, bald rechtsdrehend, bald inaktiv ist und ein spezifisches Gewicht von 0,8765 besitzt (HAENSEL). Der Aschengehalt beträgt 1 bis 2% (nach HAUKE 1–1,4%). WITTSTEIN verglich die Asche der Cetraria mit der Zusammensetzung des Bodens, auf dem sie wuchs. Er fand in der Asche 43,2% Kieselsäure, 13,2% Kali und 13,7% Kalkerde. Sie enthält auch 4% Aluminium. In der lufttrockenen Flechte findet sich 0,0198% Eisen (in der frischen: 0,0176%). Sie enthält also mehr Eisen als z. B. Spinat (BALDONI).
Lit. Ältere Analysen von PROUST, EBELING, CRAMER, TROMMSDORFF, CRELL (vgl. MURRAY, Appar. medic. 1790, V, 499, und SCHWARTZE, Pharmakolog. Tabellen 1819). — PFAFF, Syst. d. Mat. med. 1808, II, 75. — JOHN, chem. Schriften 5 (1821), S. 41. — BERZELIUS, Schweig. Journ. 7 (1813), 342 (Analyse abgedruckt in Lehrb. d. Chemie 1838, VII, 446). — GUÉRIN-VARRY, Ann. Chem. Phys. 56. — MULDER, Journ. prakt. Chem. 15 und Lieb. Ann. 28, 279. — PAYEN, Ann. sc. nat. (bot.) 14. — PEREIRA, Heilmittellehre (d. von BUCHHEIM). — DAVIDSOHN, Journ. pr. Chem. 20. — SCHMIDT, Lieb. Ann. 51. — MASCHKE, Journ. pr. Chem. 61. — HERBERGER, Über d. Bitterstoff d. isländ. Flechte (Cetrarin, Moosbitter), Buchn. Rep. 36 (1830), 226 u. 56 (1836), 273. Über das Cetrarin, Lieb. Ann. 21 (1837), 137. — SCHNEDERMANN und KNOP, Lieb. Ann. 54, 143 und 55 (1845), 144 (Jahresber. d. Pharm. 1845, 13). — STENBERG, Oefvers. Akad. Forb. 1868. Pharm. Jahresb. 1868, 31. — TH. BERG, Zur Kenntnis des in Cetraria islandica vorkommenden Lichenins u. jodbläuenden Stoffes. Diss. Dorpat 1872 und Pharm. Zeitschr. f. Rußl. XII (1873), 129; Journ. pr. Chem. 1873, 848; Ref. in Pharm. Jahresb. 1873, 19. — WITTSTEIN, Schweiz. Zeitschr. f. Pharm. VII (1862), 237. — WEIGELT, Journ. pr. Chem. 1869, 106 u. 193. — BILLEY, Lieb. Ann. 86. — FLÜCKIGER, Arch. Pharm. 196 (1871), 14. — STENBERG und KLASON, Ber. d. d. chem. Ges. (19) 1886, 2541. — ERRERA, Dissert. Brüssel 1882. — BAUER, Arch. Pharm. 224 (1886), 803. — HÖNIG u. SCHUBERT, Monatsh. f. Chem. 8 (1887), 452. — HILGER u. BUCHNER, Chem. Charakt. d. Bestandt. d. isländ. Mooses. Ber. d. d. chem. Ges. 23 (1890), 461. — SINNHOLD, Lichesterinsäure. Arch. Pharm. 236 (1898), 504. — O. HESSE, Journ. pr. Chem. 57 u. 58 (1898), 62 (1900), 68 (1903), 70 (1904), 73 (1906), 113; 76 (1907) 1. — ZOPF, Lieb. Ann. 300, 323 u. 324 (1902). — GUESDON, Lichen d’Islande. Journ. pharm. 1901, 373. — TSCHIRCH, Artikel Lichen islandicus und Cetraria in Realenzykl. d. Ges. Pharm. VI, 286. — SIMON, Cetrarsäure. Arch. d. Pharm. 240 (1902), 521 und 244 (1906), 459. — R. BÖHME, Lichesterinsäure. Arch. Pharm. 241 (1903), 1. — HÄNSEL, Bericht 1903. — HANSTEEN, Chem. Zeit. 30 (1906), 638. — ULANDER und TOLLENS, Ber. d. d. chem. Ges. 39 (1906), 401. — POULSON (Nord. Tidskr. of terapi 1908). Pharm. Zentralh. 1908, 208. — ZOPF, Die Flechtenstoffe. Jena 1907. — HAUKE, Aschengehalte. Wien 1902. — BALDONI, Arch. exp. Path. 52 (1904).
Geruch und Geschmack. Getrocknetes Isländisch Moos riecht sehr eigenartig (Flechtengeruch!) und schmeckt fade, bitter-schleimig.
Prüfung. Cetraria islandica darf nicht fremde Pflanzenteile (Moose, Coniferennadeln, andere Flechten) enthalten. Diese sind, wenn vorhanden, durch Auslesen zu entfernen.
Anwendung. Isländisch Moos wird als Tonicum, Stromachicum, bei Lungenleiden und bei Chlorose empfohlen (s. S. 272). Offenbar ist die Cetrarsäure (Cetrarin) an der tonischen Wirkung des Lichen islandicus beteiligt (HUSEMANN, das Cetrarin prüfte auch KÖHLER und RAMM). Cetrarsäure ist auch ein mildes Laxans, das die Peristaltik reizt. Sie wurde neuerdings auch als Mittel gegen die Seekrankheit empfohlen. Die alkoholische, Cetrarsäure enthaltende Tinktur besitzt jedenfalls antiemetische Eigenschaften (DEGUY und BRISSEMORET, GUESDON, GIGON). Lichesterinsäure und Protolichesterinsäure besitzen hämolytische Wirkung (KOBERT). Am meisten hat sich aber die sog. Isländisch-Moos-Pasta (ENGELHARDT), eine aus entbittertem Isländisch Moos dargestellte Gelatine, als den Hustenreiz milderndes Mittel eingebürgert.
In Island, wie überhaupt in der arktischen Zone, soll Cetraria islandica noch jetzt als Nahrungsmittel, zu Brot verbacken, oder als Gemüse von der ärmeren Bevölkerung benutzt werden. Jedenfalls ist sie ein gutes Renntierfutter. Für Zeiten der Not empfahl es ZIMMERMANN 1817, BOUCHARDAT 1842 entbittertes Lichen islandicus als Nahrungsmittel. Auch neuerdings empfiehlt HANSTEEN mit Alkalicarbonaten entbitterte Cetraria islandica gemahlen als Volksnahrungsmittel. Sie enthält ja 79,2% Lichenin u. and. stickstofffreie Extraktivstoffe (Cetraria nivalis sogar 90,2% stickstofffreie Extraktstoffe). Längere Zeit im Kochen erhaltenes Dekokt von Lich. islandicus soll seine Bitterkeit verlieren (?). Durch Tierkohle verliert es nicht nur seine Bitterkeit, sondern auch seine Eigenschaft zu gelatinieren (PERETTI).
Cetraria islandica liefert bei der Säurehydrolyse bis 70, ja sogar 72% der lufttrockenen Substanz gärungsfähigen Zucker. Der Sirup besitzt aber einen unangenehmen Geschmack. Der daraus dargestellte Alkohol riecht angenehm (STENBERG). Auf die Tatsache, daß aus Cetraria Zucker gewonnen werden kann, haben STENBERG und MÜLLER den Vorschlag gegründet, diese Flechte (und die Renntierflechte), in Gegenden wo sie häufig sind, zur Alkoholgewinnung heranzuziehen. Cetraria islandica und andere Flechten (Cladonia rangiferina) werden denn auch zur Darstellung von Alkohol benutzt. Doch soll nicht viel dabei herauskommen (SCHÜBELER). Ähnliche Versuche sind in Finland, Petersburg und Archangel gemacht worden (FLÜCKIGER).
Lit. FORTUNATOFF, Arbeit. pharm. Instit. Dorpat 1890. — GUESDON, Le Lichen d’Islande. Thèse Paris 1901, Journ. de pharm. 1901 (14), 373. — DEGUY und BRISSEMORET, Journ. des practiciens 1897. Rep. Pharm. IX, 461. — Pharm. Journ. 1897, 378. — GIGON, Mercks Ber. 1905, 50. — TAPIE, Essai sur le Lichen d’Islande (Sep. Abdr.). — BOUCHARDAT, Bull. gen. de Therap. 1842, 42. — DRAGENDORFF, Heilpflanzen. — HUSEMANN-HILGER, Pflanzenstoffe. — KÖHLER, Prager Vierteljahrsschr. 120, 49, 1873. — RIGATELLI, Gazz. eclett. 1835 und Pharm. Zentralbl. 1835, 858. — RAMM, Bittermittel in KOBERT Studien II, 1890. — K. J. ZIMMERMANN, Über d. isländ. Flechte, als Nahrungsmittel zur Zeit des Mangels und der Not usw. Bamberg 1817. — Vgl. auch SCHWEIGGERS Journ. d. Chem. VII, 317. — HANSTEEN, Nord. Flecht. als Nahrungsm. Chem. Zeit. 1905, 1286 und 1906, 30, 638. — STENBERG, Jahresb. d. Pharm. 1868 u. 1869. — PERETTI, Jahresb. d. Pharm. 1843, 88. — SCHÜBELER, Pflanzenwelt Norwegens 1873. Arch. d. Pharm. 1872, 243. — Über die Renntierflechte und eßbare Flechten vgl. auch KRASSER in WIESNER, Rohstoffe, II. Aufl. — Über eßbare Flechten vgl. auch SENFT, Über einige in Japan verwendete vegetabil. Nahrungsm. usw. Pharm. Praxis 1906 u. 1907. Über giftige Flechten: KOBERT, Lehrb. d. Intoxikationen.
Geschichte. Den Alten war das isländische Moos unbekannt. Das, was DIOSKURIDES λειχὴν, das einige βρῦον nennen (IV. Kap. 53) nennt, ist nach SPRENGEL Peltigera canina oder P. aphthosa, nach FRAAS Lecanora Parella und des PLINIUS (XXVI, 10) Lichen ist wohl Marchantia polymorpha, die gleiche Pflanze, die auch FUCHS unter Lichen abbildet. Ob sich unter einem Muscus terrestris oder Lichen von BAUHINS Pinax (I, S. 855), worunter auch Lycopodium inbegriffen ist, Lichen islandicus verbirgt, ist schwer zu sagen. Ebensowenig vermag ich in einer der in der Pharmacia des CORBEIUS (1656) abgehandelten Muscusarten das isländische Moos mit Bestimmtheit zu erkennen. Das, was GEOFFROY (Tractatus 1742, vgl. I, S. 946) unter Lichen abhandelt und von dem er eine Analyse mitteilt, war es keinesfalls. KREMPEL-HUBER ist der Ansicht, daß sich die folgende Stelle in des VALERIUS CORDUS Sylva, in der CORDUS seine Reise nach Schwaben und Böhmen (1542) beschreibt, auf Cetraria bezieht: «Muscus quidam, Crispe lactuce similis, minor et per ambitus leniter aculeatus, cespite latiusculo diffusus, nascitur in Taedacea sylva inter Suetachiam et Lauffam.» Vielleicht ist auch das Lichen in der Pharmakopoëe von Bergamo (1580) isländisch Moos (FLÜCKIGER) sowie das Lichen der CORDUS-Liste (I, S. 800). Eine Abbildung des Muscus Eryngii folio findet sich in BREYNES Miscellanea usw. Nat. Curiosor. III (1672), Nr. 289. Die Namen Lichen terrestris foliis Eryngii (BUXB.), Lichenoides rigidum Eryngii folia referens (DILLEN.) finden sich auch anderwärts. In VALENTINIS Museum (I, S. 912) ist die Beschreibung des Lichen, den er ganz richtig zwischen die Lungenflechte und das Lycopodium einreiht, konfus, und die beigegebenen Abbildungen betreffen Mandragora, mit der er es verwechselt. Bei POMET fehlt Lich. islandicus. Muscus latifolius id est pulmonaria (Lungenkraut) in der Brandenburgischen Taxe 1574 ist wohl die Lungenflechte. Denn Lichen islandicus hieß Lichen pulmonarius minor angustifolius spinis tenuissimis ad margines ornatus (MICH. Gen. 83 t. 44 f. 4; auch BARTHOLINI sagt: «Costis hinc inde spinosis horridulus»). Der Lichen terrestris cinereus, den MEAD 1702 gegen Hundswut empfahl, ist wohl ebenfalls eine andere Flechte. Dagegen ist der Muscus carthaticus islandicus des Copenhagener Catalogus 1672 (I, S. 826) Isländisch Moos. Denn 1671 wurde L. i. von BORRICHIUS als Abführmittel empfohlen (in BARTHOLINI Act. med. Hafn. I, 1671, 126). Die medizinischen Eigenschaften waren zuerst den Isländern bekannt. «Ab Islandis primam virtutis medicae notitiam profectam esse probabile est, qui ipsi in phthisi aliisque quibusdam pectoris morbis lichenem magni faciunt» (OLAFSEN bei MURRAY). Auch HIÄRNE, SCOPOLI und SCHOENHEYDER empfehlen sie gegen Phthise (und Hämoptysis). LINNÉ, der die Pflanze Lichen islandicus taufte (BARTHOLINI nannte sie Muscus islandicus purgans), empfahl (1737) ihre Anwendung warm. Er bezeichnet sie in seiner Materia medica als farinacea, eccoprotica, nutriens, hectica, und auch BERGIUS, der der Droge ein Kapitel in seiner Materia medica 1782 widmet, nennt sie eccoprotica, obwohl OLAFSEN die purgierende Wirkung in Abrede stellte. Ende des XVIII. Jahrh. war L. i. als Medikament hochgeschätzt. MURRAY sagt im Apparatus medicaminum (I, S. 952): «inter praestantissima igitur hodie medicamina splendet» und bespricht eingehend die Anwendung (a. a. O. V, p. 499). Siehe auch das bekannte Gedicht FREILIGRATHS. Die ersten Analysen sind von HIÄRNE und FUCHS. Unreines Cetrarin wurde bereits 1835 von RIGATELLI unter dem Namen «Salino antifebbrile» und «Lichenino amarissimo» gegen Wechselfieber usw. empfohlen (vgl. oben S. 268).
Der beim Kochen entstehende Schleim von Flechten der Art der C. i. scheint auch zur Appretur frühmittelalterlicher Papiere benutzt worden zu sein (KOBERT).
Daß Lichen island. als Nahrungsmittel (s. oben) brauchbar ist, berichtete schon BORRICHIUS (vgl. auch TROILS, Resa til Island). Kapitän JOHN FRANKLIN und seine Begleiter benutzten es, als sie in Amerika aller übrigen Nahrungsmittel beraubt waren, als solches (Narrative of a journey to the shores of the polar sea 1823). In der Krain wurden Schweine, Pferde und Ochsen damit gefüttert (MURRAY).
Im XVIII. Jahrh. scheint Cetraria islandica auch als Färbeflechte benutzt worden zu sein (WESTRING 1805).
Lit. A. VON KREMPELHUBER, Geschichte u. Literat. d. Lichenologie I (1867), 13, 502. — FLÜCKIGER, Pharmakognosie III und Arch. d. Pharm. 226 (1888), 1020. — SCHÜBELER, Viridarium norvegicum 1885. — JOH. TH. PH. CH. EBELING, Diss. de Quassia et Lichene Islandico. Glasgow 1779. — TROMMSDORFF, Diss. de Lich. Island. — BORRICHIUS in BARTHOLINI, Act. med. et phil. Hafn. 1671 (1674) I, 126. — HIÄRNE, Vet. Acad. Handl. 1744, 176. — FUCHS, Crells chem. Ann. 1787. — MURRAY, Apparatus medicaminum 1790, V, 499. — R. KOBERT, Über einige echte gefilzte Papiere des frühen Mittelalters. Zeitschr. Angew. Chem. 1910, 1249.
Paralleldrogen. Ähnlich wie Cetraria islandica werden (nach DRAGENDORFF) benutzt: Cetraria nivalis ACH. (in den Alpen) und C. aculeata FR. Cetraria nivalis ist in der Schauberg-Rax-Ware des Wiener Handels stets enthalten (T. F. HANAUSEK). Cetraria nivalis enthält Usninsäure und 90,2% der Trockensubstanz stickstofffreie Substanzen (Zellulosine). Aus dem Mehl der von der Usninsäure befreiten Flechte kann ein Gebäck dargestellt werden.
Lerp-Manna.
Die Lerp-Manna entsteht durch Psylla Eucalypti auf Eucalyptus dumosa CUNNINGHAM (Euc. incrassata?) in Australien, besonders auf Tasmania. Sie wird in der Weise erzeugt, daß die genannte Hemiptere mit Hilfe ihres gabeligen Schwanzes weiße Fäden absondert, welche nachher durch einen aus den Leibesringen des Insektes austretenden Sirup verklebt werden (DOBSON) und die das Gespinst darstellen, worin das genannte Insekt seinen Puppenzustand durchlebt (FLÜCKIGER). Durch kaltes Wasser geht der Zucker in Lösung und die Fäden bleiben zurück.
Der Gehalt an Fruchtzucker beträgt nach FLÜCKIGER 53,1% (nach ANDERSON 49%). Die Grundsubstanz der Fäden besteht aus einer von FLÜCKIGER Lerp-Amylum genannten Substanz, die sich durch Jodlösungen blau färbt, in kaltem Wasser kaum, in Wasser von 135–150° reichlich löslich ist und sich beim Erkalten dieser Lösung wieder abscheidet. Die Substanz, die ihrer Zusammensetzung nach (C = 43,4, H = 6,5%) zwischen Stärke und Zellulose steht, ist dem Lichenin ähnlich. Sie ist unlöslich in Kupferoxydammoniak.
Die von ANDERSON in der Lerpmanna angegebenen anderen Substanzen: Gummi, Stärke, Inulin und Zellulose sind nicht darin nachzuweisen (FLÜCKIGER). Der Feuchtigkeitsgehalt beträgt 14–15%.
Lit. ANDERSON, Journ. prakt. Chem. 47, 449 (Jahresb. Pharm. 1849, 68). — (DOBSON und) FLÜCKIGER, Wittsteins Vierteljahrsschr. 17 (1868), 161 und 18, 32. — FLÜCKIGER, Über Stärke und Zellulose. Arch. Pharm. 1871 (mit Abbild.).
4. Lignino-Membranindrogen.
Unter dem Namen Ligninomembranin mag die Holzsubstanz bezeichnet werden, d. h. der Körper, der die Membranen der Elemente des Holzkörpers bildet und der mit Jodreagentien nicht wie Zellulose reagiert. TOLLENS, dem ich meine Einteilung vorgelegt, schlägt vor, die Zelluloso-Membranine und die Lignozelluloso-Membranine als zwei Abteilungen einer Klasse zusammenzufassen und den übrigen voranzustellen, was viel für sich hat. Daß im Ligninomembranin ein Zellulosin steckt ist sicher, denn bei der Hydrolyse entstehen Zucker. Daß die Holzfaser durch Kochen mit Schwefelsäure Traubenzucker liefert, ist seit 1819 bekannt (AUTENRIETH und BAYERHAMMER, BRACONNOT). EKSTRÖM erhielt aus Holz 50–75% Glukose. Daneben treten aber auch (außer Galaktose und Mannose) Pentosen auf. Es sind also neben Manno-Gluko-Galaktanen auch Pentosane vorhanden. Diese Pentosane, die wohl niemals den Charakter von Reservestoffen tragen, spielen in den Gerüstsubstanzen der Pflanze eine große Rolle, besonders Xylane finden sich ganz allgemein in den Wänden der Zellen des Holzkörpers und verholzter Bastzellen, den harten Geweben von Früchten (Cocos) und Samen (Gossypium), wie überhaupt in den Zellen, die ich unter dem Namen «Sklereïden» zusammengefaßt habe. Während aber die Nadelhölzer nur wenig davon enthalten (2–9%), sind die Laubhölzer reich daran (20–33%). Jute enthält 15%. Methylpentosane sind in Samenschalen und Rinden nachgewiesen.
Xylan wird (nach THOMSON) in der Weise bestimmt, daß man die mit Ammoniak digerierten und ausgewaschenen Holzmehle mit 5% Natronlauge behandelt und das Filtrat mit Alkohol fällt. Xylan ist in Kupferoxydammon und Wasser löslich. Es dreht links. CROSS, BEVAN und CLAUD SMITH nehmen an, daß die Pentosane (z. B. im Stroh) an Ameisensäure zu einem Pentosemonoformal, gebunden sind. Vielleicht sind die Xylane in der Membran mit Zellulose verestert. Bemerkenswert ist, daß d-Glukose und l-Xylose ähnliche Strukturformeln haben:
und denn auch häufig nebeneinander als Produkte der Hydrolyse von Zellmembranen erhalten werden, ebenso wie:
W. HOFFMEISTER nennt die aus den nicht zuvor von den inkrustierenden Stoffen befreiten Zellmembranen durch 5% Natronlauge extrahierbaren Stoffe Holzgummi. Dieses Holzgummi ist wohl mit Xylan identisch. Da der reinen Zellulose Pentosane fehlen — sie gibt bei der Hydrolyse niemals Pentosen —, so kann die Bestimmung des Holzstoffgehaltes eines Gewebes durch Bestimmung des Pentosangehaltes nach der Methode von TOLLENS erfolgen, die darauf beruht, daß Pentosane bei der Destillation mit Salzsäure α-Furfurol:
liefern, das als Phloroglucid gefällt und gewogen werden kann.
Den Holzstoff, das Lignin oder Lignon (CROSS, BEVAN, BEADLE) faßt man meist als ein methoxylreiches Oxyderivat der Zellulose (Oxyzellulose) auf, das sowohl freie wie veresterte Hydroxyl- und wahrscheinlich auch Acetyl- und Formyl-Gruppen (vielleicht stammt die Essigsäure im Acetum pyrolignosum daher!), nach KLASON 4 CH3 und ein OH enthält. Es ist kohlenstoffreicher (55% C) als Zellulose (44,4% C). Dem Jutelignin geben TOLLENS und LINDSEY die Formel: C17H16O7(OCH3)2. KLASON, der (C40H42O11)n formuliert, bringt es zum Coniferylalkohol, EULER zu den Gerbstoffen in Beziehung. Die unten erwähnten Farbstoffreaktionen beziehen sich nach der jetzigen Auffassung nicht auf das Lignin.
Daß in der Holzmembran eine zelluloseartige Substanz die Grundlage (meist 50 bis 64% der Substanz) bildet, ist also sicher (PAYEN, HOPPE SEYLER, LANGE). Die abweichenden Reaktionen der Holzmembran rühren von einer «Inkruste» her. Die Vorstellung, daß in der Holzzellmembran die Zellulose «inkrustierende» Substanzen (matières incrustantes, Xylogen, nach DE CANDOLLES Vorgang früher Lignin genannt) vorkommen, rührt von PAYEN her. Daß diese Substanzen zum Teil aromatische sind, kann keinem Zweifel unterliegen, denn es gelingt aus der Sulfitablauge der Holzfaserbearbeitung Vanillin, Brenzkatechin und Methylfurfurol abzuscheiden (GRAFE), Verbindungen, die in ihrer Gesamtheit wohl das Hadromal CZAPEKS bilden und auf die sich die zahlreichen Holzreaktionen (mit Phloroglucin, Anilinsulfat usw.) beziehen — auch Protokatechusäure wurde unter den Abbauprodukten gefunden (ERDMANN, BENTE). Aber es unterliegt ebenso keinem Zweifel, daß dieselben nicht als Beimengungen der Zellulose zu betrachten sind, sondern offenbar in Bindung mit den Polysacchariden der Zellulose sich finden. Übrigens faßte schon F. SCHULZE (1857) die Holzsubstanz als einheitliche Substanz auf, die er Lignin nannte und C38H24O20 formulierte und auch ERDMANN betrachtete die Holzsubstanz als eine einheitliche komplexe Verbindung, C30H16O21 (Glykolignose), mit zuckerbildenden, aromatischen und Zellulosegruppen. CROSS und BEVAN nehmen in der Holzsubstanz (Zellulochinon) Zelluloseester und einen Aldehyd oder ein Keton an. Nach Behandeln mit saurem Calciumsulfit (MITSCHERLICHS Sulfitverfahren) bleibt in Kupferoxydammon lösliche Zellulose zurück, die bei der Hydrolyse Traubenzucker, Galaktose und Mannose liefert. Die Zellulose wird von Xylan (die Hydrolyse liefert daher auch Xylose, TOLLENS) begleitet und außerdem scheinen darin (ob präformiert?) 12–14% Ligninsäuren, (C20H11O8? mit 61–62% C), enthalten zu sein (LANGE). Auf die wohl erst bei der Kalischmelze (s. oben) entstehenden Ligninsäuren bezieht sich wohl MÄULES Manganatreaktion des Holzes, eine mikrochemische Reaktion, die in der Weise ausgeführt wird, daß man Kaliumpermanganat zufließen läßt, mit Wasser auswäscht, dann Salzsäure zusetzt und nach abermaligem Auswaschen Ammoniak zufließen läßt: die Holzmembran färbt sich rot.
Auf die aromatischen Holzstoffbestandteile beziehen sich die mikrochemischen Reaktionen mit Phenol-Salzsäure: blaugrün (RUNGE), Phloroglucin- (oder Resorcin-) Salzsäure: kirschrot bzw. violett (WIESNER), Pyrogallol-Salzsäure blaugrün (IHL), Naphthol-Salzsäure: grün (IHL), Indol-Salzsäure: kirschrot (V. BAEYER NIGGL), Orcin-Salzsäure: rotviolett (LIPPMANN), Skatol-Salzsäure: kirschrot (MATTIROLO), Pyrrol-Salzsäure: rot (IHL), Thiophen: grün (IHL), Anilinsulfat: gelb (RUNGE, SCHAPRINGER); ebenfalls tritt Gelbfärbung ein durch p-Toluidin (SINGER), α- und β-Naphtylamin (NICKEL), α-Bromphenetidin (PIUTTI). Die empfindlichste Reaktion ist die mit Pyrrol, die am häufigsten angewendete die mit Phloroglucin. Nicht nur Amylschwefelsäure (KAISER) und Isobutylschwefelsäure (GRAFE), sondern alle Alkylschwefelsäuren und aromatischen Sulfosäuren färben Holzstoff (nicht Zellulose) rot oder blau (HERTKORN), ebenso auch Isobutylaldehydschwefelsäure (GRAFE). Nicht alle Membranen, welche auf Permanganat (s. oben) reagieren, geben auch mit Phloroglucin Reaktion und umgekehrt (V. FABER). In den meisten Fällen fallen aber die Reaktionen zusammen (AISSLINGER). CROSS und BEVAN halten die Jutefaser (s. oben S. 255) für «typische Lignozellulose». Sie unterscheiden darin drei Bestandteile, deren Anhydroaggregat die Faser bildet: eine der Baumwollzellulose nahe verwandte Substanz, eine Pentazellulose, die Furfurol und Essigsäure liefert und einen Chinon liefernden Bestandteil. Durch Behandeln mit Sulfitlaugen (s. weiter hinten) werden oft ⅔ der im Holzstoff enthaltenen Substanzen, jedenfalls alle aromatischen Gruppen, entfernt und es bleiben 39,5–63% «Zellulose» zurück. Die Verholzung erhöht die Festigkeit der Membran nicht (SONNTAG).
Wir sind berechtigt anzunehmen, daß alle die oben genannten Substanzen in der Membran nicht gemengt, sondern chemisch miteinander verbunden sind (TOLLENS).
Lit. AUTENRIETH und BAYERHAMMER (in Berzel. Jahresber. 1822). — BRACONNOT, Ann. chim. phys. (2) 12 (1819). — RUNGE, Poggend. Ann. 31 (1834). — PAYEN, Compt. rend. 1838 und 1839. — SCHAPRINGER, Einfaches Mittel, um Holzstoff in Druckpapier zu erkennen. Dingl. polyt. Journ. 176 (1865) (Anilinreaktion). — ERDMANN, Lieb. Ann. 138, 1 und Supplem. 5, 233. — BENTE, Ber. d. d. chem. Ges. 1875. — V. HÖHNEL, Histochem. Unters. über das Xylophilin und das Coniferin. Sitzungsber. d. Wien. Akad. 76 (1877). — LIPPMANN, Sitzungsber. d. Wien. Akad. 77. — WIESNER, Karstens bot. Unters. I, 120 (1866) und Sitzungsb. d. Wien. Akad. 1878 (Phloroglucinsalzsäurereaktion). — SINGER, Ebenda 1882. — LANGE, Zeitschr. phys. Chem. 1899. — SCHELLENBERG, Beitr. zur Kenntn. d. verholzten Zellmembran. Pringsh. Jahrb. 29, 1896. — CZAPEK, Zeitschr. f. phys. Chem. 27 (1899). — GRAFE, Unters. über d. Holzsubst. Sitzungsb. d. Wiener Akad. 113 (1904) und Neue Reihe von Holzreaktionen. Öst. bot. Zeitschr. 1905. — ZETSCHE, Beitr. z. Unters. d. verholzt. Membr. Zeitschr. f. angew. Mikrosk. II. — SELIWANOFF, Bot. Zentralbl. 1891. — V. FABER, Zur Verholzungsfrage. Ber. d. d. bot. Ges. 22, 177. — AISSLINGER, Beitr. z. Kenntn. wenig bekannt. Pflanzenfas. Diss. Zürich 1907. — THOMSEN, Chem. Unters. über d. Zusammensetz. d. Holzes. Journ. pr. Chem. 19, 146. — DE CHALMOT, Ber. d. chem. Ges. 27. — E. FISCHER, Ebenda 27, 3230. — TOLLENS und LINDSEY, Lieb. Ann. 267. — EULER, Pflanzenchemie. — KLASON, Ark. f. Kemi. 1908. — G. LANGE, Zeitschr. phys. Chem. 14. — CROSS, BEVAN and BEADLE, Cellulose, an outline of the chemistry of the structural elements of plants London 1895. — MÄULE, Verhalt. verholzt. Membr. gegen KMnO4. Habilitationsschr. Stuttgart 1901. — NIGGL, Flora 1881, 545. — CZAPEK, Biochemie. — IHL, Chem. Zeit. 1885, 266 und 1890, 1571. — NICKEL, Bot. Zentralbl. 38, 754 (1889) u. Farbenreaktionen der Kohlenstoffverbind. Berlin 1890. — MATTIROLO, Zeitschr. wiss. Mikrosk. II (1885), 354. — KAISER, Chem. Zeit. 1902. 335. — TOLLENS, Pentosen u. Pentosane u. ihre Bezieh. zur Papier-Industrie. Papier-Zeitung 1907. — STACKMANN, Stud. über d. Zusammensetz. d. Holzes. Diss. Dorpat 1878. — SCHUPPE, Beitr. z. Chem. d. Holzgewebes. Diss. Dorpat 1882. — WIELER, Landw. Versuchsstat. 1885. — HENZE, Unters. über d. spez. Gew. d. verholzten Zellwand u. d. Zellulose. Diss. Göttingen 1883. — SONNTAG, Beziehungen zwischen Verholzung, Festigkeit u. Elastizität vegetabil. Zellwände. Landw. Jahrb. 1892. — TSCHIRCH, Angew. Anatomie.