Sechstes Kapitel. Vom Mechanismus des Lebens. (continued 3)
Reading edition
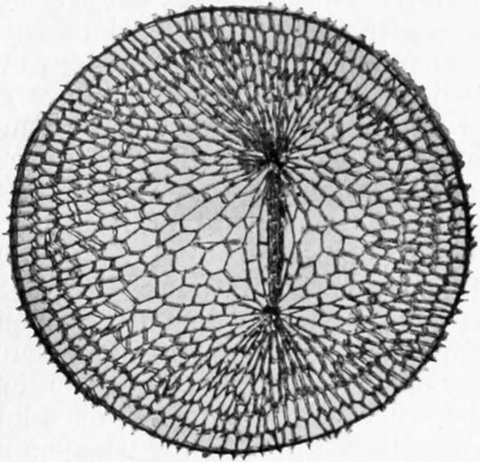
Fig. 293.
Gumminetz, an zwei Stellen durch Oeffnungen der Unterlage hindurch zusammengezogen
. Es ist zwischen den beiden Zugenden eine Spindel entstanden; zu beiden Seiten der Spindel nimmt man eine starke Vergrößerung der im ruhenden Modell überall gleich großen Gummiringmaschen wahr. Photographie, ¹⁄₁ Originalgröße. Nach R
HUMBLER
.
Der bei der tatsächlichen Höhe der Uebereinstimmung naheliegende Gedanke, daß der Zellteilungsvorgang elektrischer oder magnetischer Natur sein möge, ist aus zwei Gründen abzuweisen: erstens läßt sich, wie zuerst ROUX[709] nachgewiesen hat, die Einstellungsrichtung der Teilungsspindel in Furchung begriffener Amphibieneier weder durch Umleitung noch durch Durchströmung von irgendeiner bekannten elektrischen Stromart irgendwie gesetzmäßig beeinflussen, was bei elektrisch-magnetischer Natur der Zellteilungsvorgänge auf Grund der Anziehungs- und Abstoßungsverhältnisse benachbarter Ströme erwartet werden müßte. Zweitens kommen gelegentlich unter besonderen Umständen bei pluripolaren Zellteilungen, die sich durch mehrere Teilungszentren auszeichnen, dreipolige Zellteilungsfiguren vor, deren drei Pole durch drei Spindeln miteinander verknüpft sind. Ein derartiges Vorkommnis ist aber bei magnetisch-elektrischen Kraftlinienfiguren prinzipiell unmöglich, da nur zwischen „ungleichnamigen“ Magnetpolen, die sich gegenseitig anziehen, Spindeln erzeugt werden, und da es nur zwei Arten von Polen, nämlich N- und S-Pole gibt, so daß unter drei Polen immer mindestens zwei Pole gleichnamig sein müssen. Drei Spindeln zwischen drei Polen, wie sie bei Zelltriastern vorliegen, sind für elektrische Kraftliniendiagramme unmöglich, weil in dem magnetischen Attraktionsfeld zwischen den beiden notwendig „gleichnamigen Polen“ die Zugwirkung innerhalb der sogenannten Indifferenzzone von abstoßenden Kräften durchbrochen wird, die eine Spindelbildung verhindern[710]. Die gegebene Erklärung des Zustandekommens der Zellstrahlung und Kernspindel ist an ähnliche Bedingungen einer bestimmten Paarung der Pole nicht geknüpft; das Zellsystem arbeitet sozusagen mit neutralen Zugpolpaaren (nicht mit differenten N- und S-Polen wie der Magnetismus), die immer ziehen, wie sie auch immer und in welcher Zahl sie auch immer zusammenliegen. Um die mechanische Möglichkeit solcher Zugsysteme zu beweisen, verwendet RHUMBLER ein großes, aus sechseckigen Maschen zusammengesetztes elastisches Gumminetz, das auf einen kreisrunden, die Zellmembran veranschaulichenden Reifen aufgespannt, das Wabenwerk der Zelle vorstellen soll. Man legt das Modell auf eine feste Unterlage, durch welche an den Stellen, wo die Attraktionspole liegen sollen, Löcher gebohrt sind. Man braucht jetzt nur den jeweils über den Löchern gelegenen Teil des Netzes durch die Löcher hindurch zu fassen und durch die Löcher hindurch nach hinten zu ziehen, um eine strahlige Gruppierung der Netzmaschen um das betreffende Loch herum zu erhalten. Die Strahlung wird um so stärker, je stärker man zieht; zwischen zwei Zuglöchern entsteht jedesmal eine Spindel (Fig. 293), und was nun für uns wichtig ist, zwischen drei Zuglöchern bilden sich drei Spindeln. Das Modell beweist, daß zwischen neutralen (nicht polardifferenten) Zugzentren in einem elastischen System, dessen sechseckige Maschenanordnung der gleichen des Zellwabensystems entspricht, drei Spindeln zwischen drei Zugzentren entstehen. In dem Netzmodell ergibt sich die Longitudinalspannung der strahlig aneinandergereihten geradegezogenen Gummistrecken von selbst aus der Zugwirkung, die ihnen mitgeteilt worden ist; die senkrecht pressenden Kräfte des Zwischengebietes, die in der Zelle und in dem magnetischen ungleichpoligen Felde vorhanden waren, sollen vorläufig außer Betracht bleiben, da zunächst festgestellt werden soll, welchen Einfluß die Longitudinalspannung der Strahlen auf den in seinen Einzelteilen verschiebbaren Inhalt des Zellleibes haben wird. Um hierbei auf leichter vorstellbaren Boden zu gelangen, kann das MARTIN HEIDENHAINsche Zellteilungsmodell dienen. Die Zellmembran wird in diesem Modell durch einen Stahlreifen dargestellt, der an zwei gegenüberliegenden Stellen je ein durch Schrauben festklemmbares Scharnier trägt; auf den zwischen den Scharnieren gelegenen Halbreifen sind in gleichen Abständen die Enden von einer für beide Halbreifen gleichen Zahl, etwa 15–17, Gummischnüren (man benutzt dazu zweckmäßig langgezogene Gummiringe) angeheftet, die anderen Enden dieser Gummischnüre sind jeweils in einem die Sphäre vertretenden Springring vereinigt, so daß im ganzen zwei Sphärenringe vorhanden sind, von denen als Zentrum aus je eine gleiche Zahl von in Longitudinalspannung befindlichen Gummischnüren radiär nach dem Zellmembranreifen hin ausstrahlen, an dem sie festgebunden sind. Stellt man nun zunächst die Scharniere fest und bindet die beiden Sphärenringe zusammen, um das ursprünglich einheitliche Mutterzentrosom zur Darstellung zu bringen, und schiebt man ferner, um den Kern und seine Wirkung in dem gespannten Radiensystem zu veranschaulichen, eine entsprechend große Scheibe, einen kreisrunden Schachteldeckel etwa, zwischen diejenigen Gummischnüre, welche den Scharnieren zunächst liegen, so erhält man ohne weiteres eine von dem Modell selbsttätig herbeigeführte Lagerung der zusammengebundenen Sphärenringe und der Kernscheibe, die ganz derjenigen von Muttersphäre und Kern im Anfangsstadium der Zellteilung entspricht; die zusammengebundenen Sphärenringe liegen, wie die Muttersphäre in der Zelle dem Kern, der Kernscheibe dicht an und sind etwas aus dem Zentrum des Zellmembranreifen heraus nach einer Seite hin verschoben, während nach der entgegengesetzten Seite die Kernscheibe von dem Zentrum abgerückt erscheint. Das ganze System hat einen bilateral-symmetrischen Aufbau angenommen, dessen Symmetrieachse man erhält, wenn man sich durch die zusammengekoppelten Sphärenringe und den Mittelpunkt der Kernscheibe eine Gerade, die für die Zelle von MARTIN HEIDENHAIN als Zellachse bezeichnet wird, gezogen denkt (Fig. 294 A).
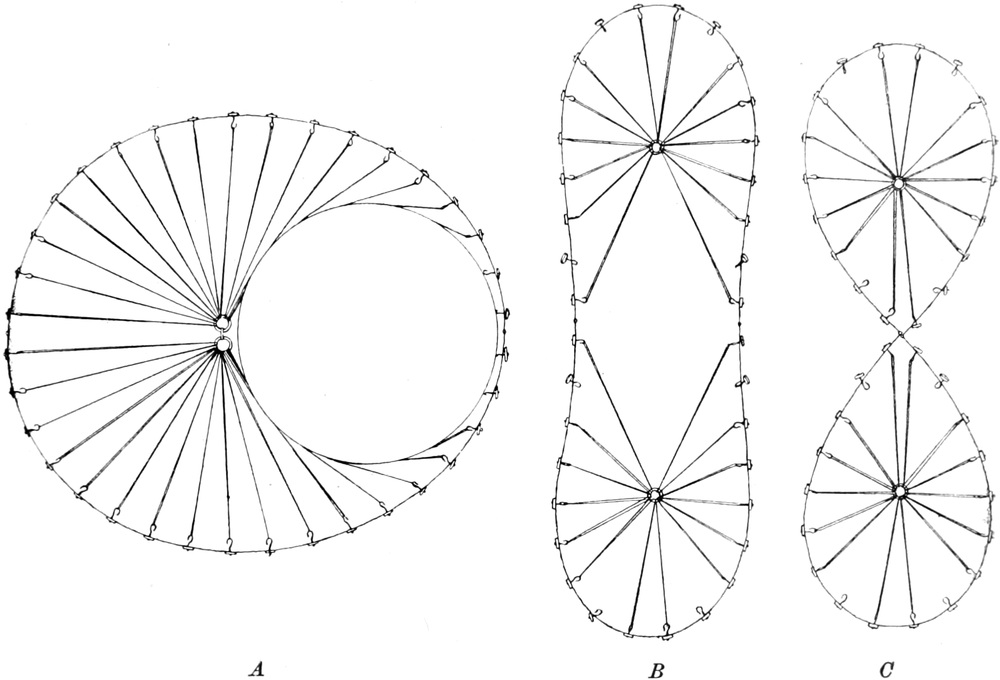
Fig. 294.
Das H
EIDENHAIN
sche Zellteilungsmodell
.
A
im Ausgangsstadium mit eingeschobener Kernscheibe, die zusammengekoppelten Sphärenringe sind exzentrisch nach links, die Kernscheibe ist in entgegengesetzter Richtung nach rechts geschoben.
B
Die Sphärenringe sind unter Längsstreckung des Modells in der Kernpolstellung angekommen, die Kernscheibe ist weggelassen.
C
Nach Lüften der Scharnierenschrauben ist die Durchschnürung des Modells erfolgt. Nach M. H
EIDENHAIN
.
Schneidet man jetzt die aneinandergebundenen Sphärenringe auseinander, um diesen Ringen die Möglichkeit zu geben, wie die aus der Teilung der Muttersphäre hervorgegangenen Tochtersphären der Zelle auseinanderzutreten, so bewegen sich nunmehr die Sphärenringe von ihrem früheren Platze aus um je einen Quadranten, um die Peripherie der Kernscheibe herum, und stellen sich an zwei entgegengesetzten Polen der Kernscheibe, die sie selbst zwischen sich in die Mitte nehmen und jetzt auch in die Mitte des ganzen Membranreifen hineinschieben, in Ruhe auf; sie sind in der sogenannten „Kernpolstellung“ angekommen. Das Modell kopiert jetzt das Stadium der Zellteilung, in welchem sich die aus der Teilung der Muttersphären hervorgegangenen Tochtersphären, durch eine dem Modellversuch entsprechende Wanderung an zwei gegenüberliegende Pole des Kerns begeben haben, um hier die Rolle der Spindelpole für die Kernspindel zu übernehmen. Ein zwischen die Sphärenringe an Stelle der Kernscheibe eingebundenes Gumminetz würde in entsprechender Weise bei den geschilderten Modellvorgängen, bei welchen die Sphärenringe sich weiter voneinander entfernen, zu einer Spindelbildung auseinandergezogen werden. Schon in der jetzt vorliegenden Form hat sich das ganze Modell, entsprechend der Längsstreckung des Zellleibes, welche der Zellteilung voraufzugehen pflegt, in der Richtung der Spindelachse in die Länge gereckt. (Die Spindelachse steht senkrecht zur früheren Zellachse [Fig. 294 B]) Gibt man hiernach die sich gegenüberliegenden und schon während der Längsstreckung des Modells einander nähergerückten Scharniere durch Lüften der Scharnierschrauben frei, so werden, unter weiterem Auseinandertreten der Sphärenringe und Eintreten jedes derselben in das Zentrum der an ihm befestigten Gummifäden, die seither sich gegenüberliegenden Scharniere bis zur direkten Berührung aneinandergepreßt, so daß das Modell jetzt in zwei Hälften geteilt erscheint, von denen jede einen Sphärenring mit abstrahlenden Gummifäden besitzt (Fig. 294 C); auch das Stadium der Zelltrennung ist demnach von dem HEIDENHAINschen Modell nach dem Freigeben der Scharniere selbsttätig in allem wesentlichen bewegungs-bildlich kopiert worden; denn auch die an den Sphären aufgehängten Bestandteile der Tochterkerne würden durch die auseinandertretenden Sphären auseinandergezogen werden müssen.
R. FICK[711] hat dem HEIDENHAINschen Modell den Vorwurf gemacht, daß es durch seine Scharniere der Zweiteilung des Modells an den äquatoriellen Stellen schon im voraus Vorschub leiste, und es ist die Frage zu beantworten, wie man, wenn die Analogie zwischen Modell und Zelle gelten soll, die doppelte Gebrauchsart der Scharniere, erst Festklemmen, dann Freigeben derselben, motivieren kann.
Zur Demonstration der Teilung der Muttersphären und der Wanderung der Tochtersphären in die Kernpolstellung mußten die Scharnierschrauben angezogen, zur Demonstration der Kerndurchschnürung mußten die Schrauben gelüftet werden, d. h. der Widerstand des Zellmembranreifens mußte an der Einschnürungsstelle während der Durchteilung bedeutend herabgemindert werden. „Vermindert aber auch die Zellmembran während ihrer Einschnürung ihre Widerstandskraft an der Einschnürungsstelle?“, so müssen wir fragen, wenn die ganzen Vergleiche mit den Modellen eine stichhaltige Bedeutung haben sollen. „Oder existieren etwa in der Zelle sonstige, durch das Modell nicht wiederzugebende Verhältnisse, welche die Membran zur Zeit der Sphärenteilung an der Einschnürung verhindern, dieselbe Einschnürung aber zur Zeit der Tochterzellentrennung gestatten?“
Beides ist der Fall, wie sich am leichtesten für kugelige Zellen nachweisen läßt, aber auch für andere Zellen ohne Zweifel gilt. Die Kugel ist für jede gegebene Masse diejenige Form, welche die denkbar geringste Oberfläche besitzt; jeder Uebertritt der Kugelform in eine andere beliebige Gestalt erfordert Oberflächenzusatz, also verlangt auch die während der Zellteilung auftretende Längsstreckung der Zelle und die Hervorbildung der Teilungsfurche Oberflächenzusatz; d. h. für den Fall, daß die Zelle von einer Zellmembran umgeben ist, kann, ehe ein erhöhtes Zellmembranwachstum eingeleitet ist, die Einschnürung trotz der Longitudinalspannung der dizentrisch gruppierten Zellleibstrahlen nicht erfolgen. Das zur Erzeugung der Teilungsfurche erforderliche „gesteigerte Oberflächenwachstum“ ist aber nach RHUMBLER erst zur Zeit der Spindelbildung ermöglicht. Zu diesem Zellmembranwachstum sind nämliche Stoffe, die der Kern zu liefern hat, notwendig, was sich daraus abnehmen läßt, daß kernlose Fragmente ihre Defekte nicht zu regenerieren vermögen (cf. p. 626 u. ff.), daß sich nach BOVERIs[712] Untersuchungen bei experimentell erzeugten polyzentrischen Furchungsmitosen, die eine überschüssige Zahl von Sphären besitzen, nur zwischen solchen Sphären eine echte Furche, also Zellscheidewand, bildet, die einen Kern zwischen sich haben, und daß der Kern auch sonst sehr häufig nach der Stelle hin verlagert ist, wo ein deutlich bevorzugtes Membranwachstum statthat (cf. p. 630). — Die zum Membranwachstum ersichtlich notwendigen Kernstoffe werden aber erst zur Zeit der Spindelbildung aus der in die Länge gereckten Kernspindel in einer zu dem gesteigerten Membranwachstum genügenden Menge herausgepreßt und verbreiten sich hier im Zellleibäquator zwischen den beiden Sphären, weil, wie das Netzmodell (Fig. 293) zeigt, die der Kernspindel zugehörigen Waben durch den dizentrischen Sphärenzug zusammengepreßt werden, während sich die um den Spindelbauch herumgelegenen Waben des äquatoriellen Gebietes aufblähen[713], so daß durch die Wabenwände passierbare Substanzen, — die ja schon angesichts des Zellmembranwachstums der ruhenden Zelle notwendig existieren müssen, — aus den Spindelwaben austreten und in die äquatorialen Zellleibwaben übertreten müssen.
In der Aequatorialebene werden die von dem Kern gelieferten Substanzen dann auf die Zelloberfläche treffen und hier das notwendige Wachstum einleiten, wie sich denn in zahlreichen Fällen hier zuerst eine stärker färbbare Substanz ringartig um den Zelläquator herumzieht, welche die erst später dichter werdende und dann nicht mehr besonders färbbare Teilungsmembran darstellt, und deren mechanische Wirkung man direkt mit der Scharnierwirkung im HEIDENHAINschen Modell vergleichen kann, da die jugendliche Zellmembransubstanz wohl ohne Bedenken als weniger widerstandsfähig (gegen die zentripetalen Zugkräfte) angesehen werden darf als die älteren Membranteile. Das Scharnier am HEIDENHAINschen Modell und seine verschiedene Anwendung ist also dadurch gerechtfertigt, daß vor der Ankunft der Tochtersphären in der Kernpolstellung die Zelloberfläche wegen noch zu geringer Größe dem dizentrischen Zuge nicht folgen kann, das Scharnier demnach in dieser Periode im Modell festgestellt werden muß, während nach der Spindeleinstellung die Zellmembran vermöge ihres jetzt ermöglichten gesteigerten Membranwachstums dem dizentrischen Zug zu folgen vermag, so daß alsdann die Scharniere im HEIDENHAINschen Modell freizugeben sind. Das Zellteilungsmodell zeigt also in der Tat, daß die Longitudinalspannung, die wir für die Zellleibstrahlen nach der RHUMBLERschen Theorie in Anspruch genommen haben, den Ablauf der Cytokinese und die mit ihr verbundene Zelldurchschnürung mechanisch verständlich macht.
Es fragt sich jetzt noch, ob es nicht einfacher wäre, mit HEIDENHAIN[714] anzunehmen, daß die Zellleibstrahlen elastisch gespannte Fäden (von gleicher Ausgangsspannung bei gleicher Ausgangslänge) wären, als der RHUMBLERschen auf den Wabenbau begründeten komplizierteren Theorie Gehör zu geben.
Ganz abgesehen von allen anderen Unwahrscheinlichkeiten, die von anderen Seiten gegen die HEIDENHAINsche Annahme der Wirksamkeit elastischer Fäden in flüssiger Umgebung erhoben worden sind, könnten solche elastische Fäden innerhalb eines einheitlichen flüssigen interfilaren Mediums weder die Kernspindel hervorbilden, noch den gebogenen Verlauf der in dem Polgebiet der Zelle vorhandenen Strahlen annehmen, der sehr häufig beobachtet wird (cf. R. HERTWIG)[715], und auf dessen Aehnlichkeit mit den entsprechenden Strahlen magnetischer Kraftlinienspindeln (cf. Fig. 291 mit Fig. 292) neuerlich E. B. WILSON[716] besonders aufmerksam gemacht hat. Das HEIDENHAINsche Modell versagt die Wiedergabe dieser Biegungen und die Spindelbildung, weil ihm die senkrecht gegen die Strahlen anpressenden Kräfte fehlen. In einer einheitlichen Flüssigkeit, die von allen Seiten gleichmäßig auf ihre Einlagerungen drückt, müssen elastisch gespannte Fäden immer zu geraden Linien werden. Haben wir dagegen, wie RHUMBLER behauptet, in den radialen Gebieten longitudinal gespannte, nach Verkürzung strebende Alveolenpartien, in den interradialen Zellleibpartien dagegen ein aufquellendes Alveolenwerk vor uns, dessen Alveolenwände mit denjenigen der radialen Gebiete in direkter Kontinuität stehen, so muß der Aufquellungsdruck des interradialen Alveolenwerks senkrecht gegen die nach Verkürzung strebenden Radialwaben anpressen, und man weiß sofort aus der Analogie mit den magnetischen Kraftlinienfiguren, wo ja auch die eine Längsspannung vertretenden Kraftlinien senkrecht gegen sie anpressende Widerstandskräfte zwischen sich haben, daß unter solchen Umständen die Bildung der Kernspindel ebensowohl als die Polbiegung der Zellradien in einfacher Weise erklärt werden.
In Betreff weiterer Einzelheiten muß auf RHUMBLERs Originalarbeiten verwiesen werden, wo man neben den genannten und dort eingehender entwickelten mechanischen Hauptfaktoren, neben der durch die Sphären bewirkten Strahlenkontraktion und neben dem Zelloberflächenwachstum also, noch besondere Hilfsfaktoren abgeleitet finden wird, die dem Zellteilungsvorgang eine größere Sicherung und durch besondere Ausbildung und mechanisch erklärbare Kombination einzelner Faktoren auch eine große, die verschiedenen Formen verschiedenartiger Zellteilungen erklärende Variationsfähigkeit verleihen.
Wenn hiernach die Mechanik der während der Zellteilung auftretenden Gruppierungen, Transporte und Umlagerungen der verschiedenen Konstituenten des Zellleibes einer Erklärung zugänglich ist, so existiert doch leider bis jetzt noch keine ähnlich durchgebildete Theorie für die Mechanik der komplizierten Umlagerungsvorgänge der Kernbestandteile. So sehr auch die RHUMBLERsche Theorie bereits auf fortgesetzte Stoffaustausche zwischen Kern und Zellleib während der Zellteilung hinweist; wie die karyokinetischen Figuren zustande kommen, ist bis jetzt noch unbekannt; doch bleibe nicht unerwähnt, daß sich auch hier vielleicht ein für die weitere Ergründung der Vorgänge gesicherterer Boden durch Heranziehung lebloser Vergleichsobjekte gewinnen lassen wird. Ein solches Vergleichsobjekt scheint sich in den Vorgängen zu bieten, die LEDUC[717] bei dem Einträufeln von verdünnter Tuschelösung oder verdünnter Tinte oder Blut in Salzlösungen, z. B. von Kochsalz oder Salpeter, beobachtet hat und die er lediglich als Diffusionsvorgänge deutet, bei denen wahrscheinlich aber auch elektrische Prozesse mitspielen, da RHUMBLER[718] mit Hilfe eines Magneten die betreffenden Konfigurationen beeinflussen konnte und die Verwendung von Salzlösungen, also von Elektrolyten, von vornherein elektrische Ladungen wahrscheinlich macht.
Nach dem Aufträufeln entstehen nach einiger Zeit aus den Tropfen Strahlungen von oft wunderbarer Schönheit; das Merkwürdigste aber ist, daß LEDUC den ganzen Ablauf der chromatischen Umlagerungen (cf. p. 230 u. ff.) während der Zellteilung sich in richtiger Folge portraitgetreu abspielen sah, wenn er folgendermaßen verfuhr: Er brachte in eine Salzlösung einen mit etwas dünnerer Salzlösung vermischten Tusche-, Tinten- oder Blutstropfen und bettete diesen Tropfen zwischen zwei andere der gleichen Substanz, die aber mit stärker konzentrierter Salzlösung versetzt waren. Die äußeren, hypertonischen Tropfen bildeten sich dabei zu den von Strahlen umgebenen Spindelpolen aus, während der mittlere, hypotonische Tropfen die Kernnachahmung übernahm. Die gefärbten Substanzen gruppierten sich nämlich in dem mittleren Tropfen zunächst zu einem Knäuel, dieses zerfiel dann in den Chromosomen vergleichbare Stücke; die Stücke traten in die Aequatorialebene ein und wurden — nach den Angaben LEDUCs — längsgespalten. Auf diese Längsspaltung hin erfolgte ein Transport der Spalthälften, die V-Form dabei annahmen, nach beiden Polseiten hin, ganz wie bei der Karyokinese.
Daß auf diese Weise sehr beachtenswerte Aehnlichkeiten mit karyokinetischen Figuren[719] zuwege kamen, zeigt Fig. 295, welche die Photographien zweier von LEDUC künstlich erzeugter Spindeln mit Polstrahlen wiedergibt.
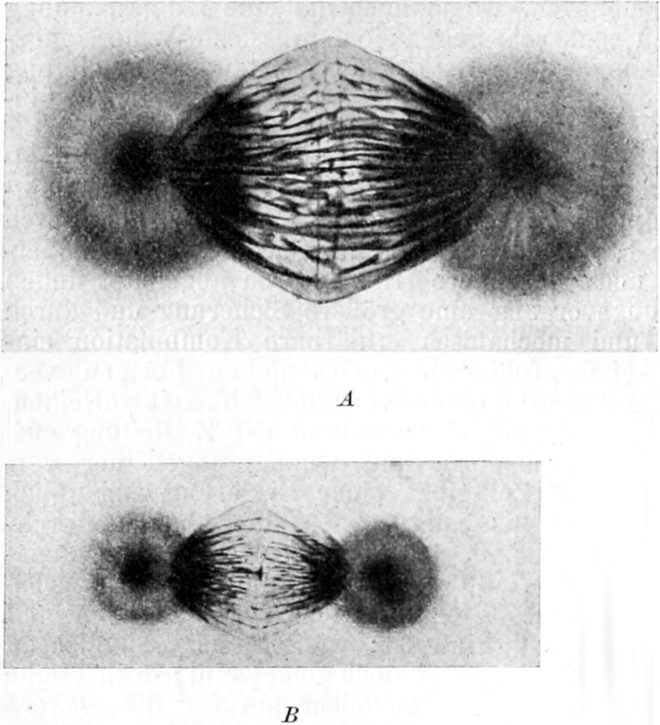
Fig. 295.
A
Künstlich erzeugte karyokinetische Figur
von L
EDUC
,
B
aus G
ALLARDO
.
Wenn sich die Angaben LEDUCs, die leider sehr wenig ausführlich sind, in vollem Umfange bestätigen sollten, so dürfte hier ein relativ unschwer zu analysierendes mechanisches Analogiemodell für die Kernteilung vorliegen, das auch eine entsprechend einfache Erklärung für die dem Aussehen nach sehr komplizierten Kernteilungsvorgänge verheißt. Möglicherweise werden dann auch hier anziehende und abstoßende Wirkungen, die bei den LEDUCschen Figuren wohl durch elektrische Ladungen zu erklären sind[720], durch andere Faktoren — vielleicht durch die Oberflächenspannung der agierenden Substanzen — in Gang gebracht, in ähnlicher Weise, wie das auf den voranstehenden Seiten für die Vorgänge im Zellleib gezeigt worden ist, hier jedoch für den Zellkern nicht näher ausgeführt werden kann.
Unabhängig aber von einer derartigen etwa möglichen Erklärung ist die Tatsache, daß der Kern durch das Auseinanderweichen der beiden Spindelpole in die Länge gezogen und einfach durchgeschnürt wird, in ihrem Gesamtbild nichts als ein einfacher Modus der Oberflächenvergrößerung des Kerns bei gleichbleibender Masse, und die darauffolgende Durchschnürung des Protoplasmas bedeutet das gleiche für den ganzen Zellkörper. Es ist die einfachste Form einer Korrektur des zwischen Oberfläche und Masse bei fortgesetztem Wachstum entstandenen Mißverhältnisses, und gerade diese einfachste Form der Fortpflanzung dürfte einst der mechanischen Erklärung verhältnismäßig die geringsten Schwierigkeiten in den Weg stellen.
Mit der Teilung der Zelle in zwei selbständige Zellen wird in den beiden Teilprodukten das Verhältnis von Oberfläche zu Masse wieder ein ganz anderes, als es in der großen Zelle vor der Teilung war. Die Folge davon ist, daß sich auch die Stoffwechselverhältnisse wieder verändern werden, und daß die Zelle wieder denselben Zustand annimmt, den die Mutterzelle hatte, als sie durch Teilung entstanden war und als selbständiges Individuum zu wachsen begann. Es wiederholt sich also von einer Zellteilung zur anderen derselbe Zyklus von Veränderungen, der durch das Wachstum des Zellkörpers und die dadurch veranlaßten Störungen im Stoffwechsel bedingt ist. Sind diese Veränderungen gering, so werden sie sich äußerlich in der Formbildung der Zelle, abgesehen von der Größenzunahme, nicht besonders bemerkbar machen. Die Mehrzahl aller Zellen zeigt dieses Verhältnis, indem sie einfach wächst und, wenn sie eine bestimmte Größe erreicht hat, sich teilt, und so fort. Wo dagegen die durch das Wachstum bedingten Stoffwechselstörungen bedeutender sind, da werden dieselben auch in einer Veränderung der äußeren Form des Zellkörpers zum Ausdruck kommen, und wir bekommen eine typische Entwicklung der Zelle. Eine große Anzahl der freilebenden einzelligen Organismen weist diesen Vorgang auf, und zwar besonders diejenigen, deren Zellkörper bei der Teilung nicht in zwei Hälften, sondern in eine größere Anzahl von Teilen oder „Sporen“ zerfällt. Die Größendifferenz der Spore und des ausgewachsenen Infusors ist allerdings ganz bedeutend. Daher müssen auch die Stoffwechselunterschiede ganz bedeutend sein, und es bedarf einer längeren Entwicklung, bis die Spore sich wieder zu einem ausgewachsenen Infusor ausgebildet hat.
So läßt sich die Entwicklung der Zelle, die periodische Wiederkehr eines und desselben Zyklus von Formveränderungen von einer Zellteilung bis zur anderen, von einer Sporenbildung bis zur anderen als ein Ausdruck der Veränderungen betrachten, welche durch das Wachstum im Stoffwechsel der Zelle hervorgerufen werden. Freilich müssen sich während des Wachstums bei der engen Korrelation aller Zellteile unter sich und mit den Faktoren des Mediums noch unzählige andere, sowohl chemische als physikalische Momente herausbilden, die sämtlich wieder mit eingreifen, um die Veränderungen der Zellenform zu unterstützen und zu befördern. Aber als fundamentale Bedingung aller dieser Veränderungen brauchen wir keinen anderen Faktor anzunehmen als das Wachstum. Das Wachstum allein genügt, um die zyklische Folge von Formveränderungen mechanisch verständlich zu machen, die wir Entwicklung nennen. Das Wachstum ist das Grundphänomen des Formwechsels.
** *
b) Entwicklungsmechanik.
Eine Frage, welche die Entwicklung des vielzelligen Organismus durch fortgesetzte Teilung aus der Eizelle betrifft, ist in neuerer Zeit Mittelpunkt lebhafter Erörterungen geworden. Das ist die Frage: Wie kommt die Teilung einer Zelle in zwei ungleiche Hälften zustande, ein Vorgang, der die Grundbedingungen für die Entwicklung jedes differenzierten Zellenstaates bildet? Diese Frage, die von fundamentaler Bedeutung für das Verständnis der Entwicklung aller höheren Organismen ist, wird auf zwei sehr verschiedene Weisen beantwortet. Die Ansicht einer Reihe von Forschern schließt sich im großen ganzen der Theorie von HIS[721] über die „organbildenden Keimbezirke“ an. ROUX[722], WEISMANN[723] und viele andere folgen, wenn auch mit einigen Modifikationen, dieser Ansicht, welche besagt, daß bereits in der Eizelle verschiedene Bezirke vorhanden sind, die bei der fortgesetzten Teilung auf verschiedene Teilzellen übertragen werden, und deren jeder das Material für die Entwicklung ganz bestimmter Gewebe und Organe liefert. Mit anderen Worten: Die Anlagen für die verschiedenen Körperteile des fertigen Organismus sind bereits in verschiedenen Teilen des Eies getrennt nebeneinander. Die Hauptstütze dieser Ansicht bilden die Experimente, die ROUX am Froschei angestellt hat, bei denen er beobachtete, daß sich nach künstlicher Zerstörung einer der beiden ersten Furchungszellen aus der anderen zunächst nur Hemiembryonen entwickelten, d. h. Embryonen, denen die eine Körperhälfte ganz fehlte, daß freilich die fehlende Hälfte später durch „Postgeneration“, wie ROUX sich ausdrückt, nachgebildet werden kann. Dem steht die Ansicht einer anderen Reihe von Experimentatoren, vor allem von PFLÜGER[724], O. HERTWIG[725] und DRIESCH[726] gegenüber, welche die Existenz „organbildender Keimbezirke“ in der Eizelle leugnen und sich vorstellen, daß die Differenzierung der gleichartigen Eizelle in verschiedenartige Teilzellen lediglich durch die Einwirkung äußerer Faktoren auf die verschiedenen im Ei enthaltenen Stoffe herbeigeführt wird. So wirkt z. B. bei Eiern, die, wie das Froschei, verschieden schwere Substanzen — im Froschei findet sich eine weiße, dotterreichere und eine pigmentierte, protoplasmareichere — enthalten, die Schwerkraft in der Weise, daß sie sich polar differenzieren, so daß die schwerere Substanz unten, die leichtere oben zu liegen kommt und bei Drehung des Eies immer wieder in diese Lage zurückkehrt. Bei der ersten Teilung des Eies wird diese polar differenzierte Zelle durch eine senkrechte Furche in zwei gleiche Hälften geteilt, von denen jede gleich viel weiße und schwarze Substanz enthält. Brachte PFLÜGER aber Froscheier in eine abnorme Lage und fixierte er sie darin, so wurden die Eier bei der Furchung häufig in zwei ganz ungleiche Teile gefurcht, von denen der eine vorwiegend die helle, der andere die dunkle Masse enthielt, und trotzdem entwickelten sich normale Larven daraus. Aus diesen Tatsachen schloß man, daß der Inhalt des Eies also nicht schon so differenziert sein kann, daß sich aus jedem Teil nur gewisse Organe entwickeln können, sondern daß vielmehr im Ei die verschiedenen Bezirke noch durchaus gleichwertig sein müssen für die spätere Entwicklung. Dafür schien übrigens auch die von O. HERTWIG beobachtete Tatsache zu sprechen, daß sogar einzelne kleine Stücke der Eizelle, wenn sie nur lebensfähig sind und befruchtet werden, sich zu ganzen Individuen entwickeln. Gegenüber den Beobachtungen von ROUX stellte ferner DRIESCH an Seeigeleiern fest, daß aus jeder der zwei, vier oder acht ersten Furchungszellen, wenn er sie durch Schütteln voneinander isoliert hatte, sich stets vollkommene Individuen entwickelten, die sich nur durch ihre geringere Größe von den normalen unterschieden, eine Tatsache, die übrigens seitdem von zahlreichen Beobachtern an verschiedenen Tierarten, unter anderen auch von O. HERTWIG an ROUX’s eigenem Versuchsmaterial, dem Froschei, bestätigt worden ist. Daß sich ferner aus den einzelnen durch die Teilung der Eizelle entstehenden Furchungszellen durchaus nicht ganz bestimmte Teile oder Organe des Embryo entwickeln, suchten DRIESCH und HERTWIG im Verfolg des bereits von PFLÜGER angestellten Versuches noch auf andere Weise zu zeigen, indem sie, wie PFLÜGER, Froscheier zwischen zwei Glasplatten so einklemmten, daß sich die aus der Teilung hervorgehenden Zellen nur in eine Ebene lagern konnten, statt zu einem kugeligen Haufen, daß also eine ganz abnorme Verlagerung der Furchungszellen gegeneinander eintrat. Trotzdem entwickelten sich daraus vollständig normale Embryonen. Aus dieser Tatsache glaubte man notwendig den Schluß ziehen zu müssen, daß die einzelnen bei der Furchung entstehenden Teilzellen keine bestimmten Organanlagen repräsentieren, und daß auch in der Eizelle mithin keine „organbildenden Keimbezirke“ vorhanden sein können.
Fassen wir die Gegensätze, die sich in beiden gegenüberstehenden Theorien aussprechen, kurz zusammen, so ist die Vorstellung organbildender Keimbezirke im wesentlichen nichts anderes als ein Rest der alten, hier mehr, dort weniger klaren Präformationslehre, wie sie zur Zeit HALLERs blühte, nur in etwas modernerem Gewande, während die Ansicht von der Gleichwertigkeit der verschiedenen Teile der Eizellsubstanz im allgemeinen den Standpunkt der Epigenesislehre CASPAR FRIEDRICH WOLFFs repräsentiert, wie ihn in der neueren Entwicklungsgeschichte vor allem HAECKEL stets mit großer Entschiedenheit vertreten hat. In dieser extremen Fassung sind beide Lehren unvereinbar miteinander. Allein, es kann keinem Zweifel unterworfen sein, daß die Entwicklung eine wirkliche Epigenese ist, und daß die Annahme einer minutiösen Präformation der verschiedenen Organanlagen in der Eizelle in der Form, wie sie namentlich WEISMANN und DE VRIES[727] gemacht haben und wie sie der alten Präformationslehre zugrunde lag, ganz entschieden nicht den Tatsachen entspricht. Die Tatsache, daß auch kleine Stücke einer Eizelle, ferner die isolierten Furchungshälften und -viertel noch einen normalen vollständigen Organismus von entsprechend geringerer Größe liefern, wenn sie nur alle wesentlichen zur Erhaltung des Lebens nötigen Zellbestandteile enthalten, sowie die Tatsache, daß bei der Verlagerung der Furchungskugeln Tiere mit völlig normaler Lagerung der Organe entstehen, läßt die Unhaltbarkeit einer solchen Annahme ohne weiteres erkennen. Auf der anderen Seite muß aber zugegeben werden, daß ebenso wie in zahllosen anderen Zellen auch in vielen Eizellen sich spezielle Differenzierungen verschiedener Protoplasmapartien schon mikroskopisch unterscheiden lassen. Werden diese Differenzierungen bei der Teilung in ungleicher Weise auf die Teilhälften übertragen, so ist es ganz selbstverständlich, daß daraus auch Verschiedenheiten in den von den verschiedenen Teilhälften abstammenden Entwicklungsprodukten resultieren müssen. Aber damit ist noch keine Mosaikstruktur im Sinne der Präformationslehre gegeben. Vielmehr existieren sicherlich zahllose Eier, bei denen die Differenzierung so gering ist, daß jeder Bruchteil, wenn er nur die zur Erhaltung des Lebens nötigen Zellbestandteile mitbekommt, auch imstande sein wird, den ganzen Organismus zu reproduzieren. Auf jeden Fall ist in jeder Eizelle die Differenzierung verschiedener Bezirke eine ganz verschwindend geringe im Vergleich zu der ungeheuren Differenzierung der Teile, die der fertig entwickelte Organismus zeigt. Es kann also von einer wirklichen Präformation der Organe und Teile des fertigen Organismus in der Eizelle im Sinne der alten Einschachtelungstheorie, auch wenn es sich nur um die Anlage eines jeden Teiles oder Organes handeln sollte, auf keinen Fall die Rede sein. Die ganze große Fülle von Differenzierungen, die sich im Laufe der Entwicklung eines Wirbeltierkörpers herausbilden, beruht auf Epigenese.
Aber noch ein anderer Gegensatz ist in den beiden oben skizzierten Anschauungen zum Ausdruck gekommen. Während die Theorie von WEISMANN und ROUX die wesentlichen Bedingungen für die Entstehung differenzierter Tochterzellen bei der Teilung des Eies in der Eizelle selbst sucht, findet sie die Vorstellung von PFLÜGER und HERTWIG vorwiegend in den von außen her auf die Zelle einwirkenden Faktoren. Während nach der einen Ansicht die Zellen sich aus inneren Bedingungen heraus in ungleiche Teilprodukte teilen, sind es nach der anderen Meinung wesentlich äußere Faktoren, welche die Ungleichheit der Zellen bei fortgesetzter Teilung erzeugen. Hier ist nun zweifellos ein Punkt, an dem eine Vereinbarung zwischen beiden gegenüberstehenden Ansichten auf dem Boden unserer konditionalen Auffassung der Lebensvorgänge möglich ist.
Nach unserer oben entwickelten Vorstellung vom Mechanismus der Entwicklung und Fortpflanzung der einzelnen Zelle auf Grund der durch das Wachstum entstehenden Stoffwechselveränderungen liegt es auf der Hand, daß innere und äußere Bedingungen der Formveränderung sich überhaupt nicht voneinander trennen lassen. Die gesamte Formbildung und Formveränderung ist danach ein Kompromiß, eine Wechselwirkung zwischen den innerhalb und den außerhalb der Zelle gelegenen Faktoren, so wie der ganze Lebensvorgang nur durch die Summe der inneren und äußeren Lebensbedingungen eindeutig bestimmt ist. Dadurch, daß die Zelle infolge der charakteristischen Beschaffenheit ihrer lebendigen Substanz die Eigentümlichkeit besitzt, von außen Stoffe in sich aufzunehmen und Stoffe von innen nach außen abzugeben, ist schon in dem elementaren Lebensvorgang, dem Stoffwechsel selbst, ein Kompromiß zwischen inneren und äußeren Momenten gegeben, ohne den das Leben der Zelle nicht möglich ist. Indem die Zelle aber wächst, werden durch diese Veränderung der inneren Bedingungen wieder die Beziehungen mit den äußeren Faktoren verändert, so daß dieselben jetzt in anderer Weise einwirken als vorher. So wird in jedem Zeitmoment ein anderer Kompromiß zwischen Zelle und Medium, zwischen inneren und äußeren Faktoren geschlossen, dessen Ausdruck die Veränderung, die Entwicklung und schließlich die Fortpflanzung der Zelle ist. Hiernach ist es klar, daß wir weder sagen können: die Veränderung der Zelle und die Differenzierung ihrer Teilungsprodukte sei allein die Folge ihrer inneren Beschaffenheit, noch auch: sie sei allein die Wirkung äußerer Faktoren. Wir können nur sagen: die Entwicklung und Fortpflanzung der Eizelle und die Differenzierung der aus ihrer Teilung hervorgehenden Zellgenerationen ist ein Ausdruck der durch das Wachstum bedingten fortschreitenden Veränderungen in den Wechselbeziehungen zwischen lebendiger Substanz und Medium.
Das fundamentale Unterscheidungsmoment zwischen der einzelnen freilebenden Zelle und der sich zum Zellenstaat entwickelnden Eizelle liegt ganz allein darin, daß bei der Entwicklung der Eizelle die aus dem Teilungsprozeß hervorgehenden Tochterzellen miteinander im Zusammenhang bleiben, während sich die bei der Teilung des einzelligen Organismus entstehenden Tochterzellen sofort nach der Teilung voneinander trennen. Beim einzelligen Organismus machen daher die Wechselbeziehungen zwischen Zelle und Medium immer nur wieder denselben kurzen Zyklus von Veränderungen durch; bei der Teilung der Eizelle dagegen ändern sich die Wechselbeziehungen zwischen Zelle und äußeren Faktoren mit jeder der schier unzähligen Teilungen wieder in ganz neuer Weise. Daher kommt es, daß die Eizelle bis zur Entwicklung des vielzelligen Organismus eine so ungeheuer lange Reihe von Formveränderungen durchlaufen muß, während der einzellige Organismus entweder eine kaum merkbare Entwicklung oder doch nur einen kurzen Kreis von Veränderungen durchzumachen braucht. Läßt das Wachstum im vielzelligen Organismus allmählich nach, so erfahren die Zellen auch immer weniger Formveränderungen, und manche Gewebezellen, wie z. B. die Ganglienzellen, die im fertigen Organismus nur noch ein beschränktes Wachstum zeigen, teilen sich nicht mehr und differenzieren sich nicht weiter. In Wirklichkeit hört indessen, wie wir a. a. O.[728] sahen, die Entwicklung überhaupt nie ganz auf bis zum Tode; nur treten später die Veränderungen so überaus langsam auf und sind verhältnismäßig so gering, daß wir sie selbst innerhalb langer Zeiträume kaum bemerken. In diesem scheinbar stationären Zustande sind die Gewebezellen wieder mehr jenen einzelligen Organismen ähnlich, die noch keine kompliziertere Entwicklung haben: bei beiden ändern sich die Wechselbeziehungen zwischen inneren und äußeren Faktoren nur in unmerklicher Weise, indem sie bei den Gewebezellen zu langsam verlaufen, bei den Einzelligen zu gering sind und immer wieder zu ihrem Anfangspunkt zurückkehren. Bei beiden nehmen wir daher keine wesentlichen Formveränderungen wahr.
Aus dieser Ueberlegung geht hervor, wie verkehrt es ist, wenn man aus der Tatsache, daß sich die kleine Eizelle zu einem so erstaunlich komplizierten Zellenbau differenziert, die Vorstellung herleiten will, daß die lebendige Substanz der Eizelle gegenüber der jeder anderen Zelle, sowohl jedes einzelligen Organismus wie jeder Gewebezelle, sich durch eine ganz undenkbar feine und komplizierte „Struktur“ auszeichnen müsse. Diese Vorstellung, auf die man ziemlich häufig stößt, ist aber ebenfalls weiter nichts als noch ein heimlicher Rest der Präformationslehre und, wie wir sahen, ebenso überflüssig wie unberechtigt; denn die Entwicklung und Differenzierung des Zellenstaates aus der Eizelle beruht lediglich auf den mit dem kontinuierlichen Zellwachstum, mit jeder Zellteilung sich fortwährend weiter verändernden Wechselbeziehungen zwischen der lebendigen Substanz der Zellen und den äußeren Faktoren. Das Wachstum ist der Fundamentalvorgang aller Entwicklung überhaupt, sowohl der einzelnen Zelle als des ganzen Zellenstaates, und wir können diese wichtige Tatsache kaum besser ausdrücken als mit den Worten des Altmeisters der Entwicklungsgeschichte selbst, mit den Worten, in denen einst KARL ERNST V. BAER[729] das allgemeinste Ergebnis seiner Studien über die Entwicklungsgeschichte der Tiere zusammenfaßte: „Die Entwicklungsgeschichte des Individuums ist die Geschichte der wachsenden Individualität in jeglicher Beziehung.“
Fassen wir unsere Erörterungen über die Mechanik der Entwicklung in einem übersichtlichen Bilde zusammen, so kommen wir zu folgender Vorstellung. Die sich entwickelnde Zelle repräsentiert, wie jede Zelle, ein System von lebendiger Substanz, das durch einen ganz bestimmten Stoffwechsel charakterisiert ist. Dieser Stoffwechsel ist der Ausdruck der Wechselbeziehungen, die zwischen dem Medium mit seinen einzelnen Faktoren einerseits und der Zelle mit ihren mannigfachen Inhaltsdifferenzierungen anderseits bestehen. Indem die Zelle wächst, ändern sich notwendigerweise die Wechselbeziehungen zwischen dem Medium und der Zelle, weil sich das Verhältnis von Oberfläche und Masse der lebendigen Substanz mehr und mehr verschiebt. Infolgedessen finden wir auch eine Veränderung des Stoffwechsels, denn der Stoffwechsel ist stets eindeutig bestimmt durch die jeweilige Summe der inneren und äußeren Lebensbedingungen. Aendern sich einzelne dieser Bedingungen, so ändert sich auch entsprechend der Stoffwechsel. Was wir mit einem kurzen Worte Stoffwechsel oder Lebensvorgang nennen, ist ja nur ein Ausdruck für die Summe sämtlicher inneren und äußeren Lebensbedingungen. Wir haben also in der wachsenden Zelle eine kontinuierliche Aufeinanderfolge verschiedener Stoffwechselzustände in ganz allmählichem Uebergang, in der Weise, daß jeder folgende Zustand mit Notwendigkeit aus dem vorhergehenden resultiert. Da die Form, wie überall in der Körperwelt, unter anderem eine Funktion des Baumaterials ist, so ist es erklärlich, daß sich mit der Veränderung des Stoffwechsels auch die Form der Zelle unter gewissen Bedingungen verändern wird, und so haben wir Hand in Hand gehend mit der Aufeinanderfolge verschiedener Stoffwechselzustände auch eine kontinuierliche Aufeinanderfolge verschiedener Formzustände, mit anderen Worten: wir haben eine Entwicklung. Es ergibt sich daraus, daß die Entwicklung der Zelle eine wirkliche „Epigenese“ ist, im Sinne CASPAR FRIEDRICH WOLFFs, d. h. eine Aufeinanderfolge immer neuer Formzustände, nicht ein deutlicheres Hervortreten schon vorher präformierter, aber noch nicht wahrnehmbarer Strukturdifferenzierungen der lebendigen Substanz, wenn auch immerhin bereits in manchen Eizellen einzelne funktionell verschiedene Bezirke bestehen. Je nach dem Grade der Veränderungen in den Wechselbeziehungen zwischen Medium und Zelle wird aber die Formveränderung in einem Falle weniger, im anderen Falle mehr zum Ausdruck kommen, am meisten in den Fällen, in denen sich die Beziehungen zwischen Zelle und Medium rapide und andauernd ändern, indem die infolge des Wachstums sich teilenden Zellen im Zusammenhang miteinander bleiben und gegenseitig aufeinanderwirken, wie bei der Entwicklung des Zellenstaates der Pflanzen und Tiere aus der Eizelle.
c) Struktur und Flüssigkeit.
Wir haben an einer anderen Stelle besonderen Wert darauf gelegt, daß die lebendige Substanz im wesentlichen die Eigenschaften einer Flüssigkeit besitzt. Bei der Formbildung spielt aber noch ein anderes Moment eine bedeutende Rolle, das ist ihre Struktur. Da es auf den ersten Blick scheinen könnte, als ob Struktur und Flüssigkeit zwei Dinge sind, die sich gegenseitig ausschließen, so wird es zweckmäßig sein, erst auf diese Frage einzugehen[730].
Wenn wir unter Struktur eine bestimmte gegenseitige Anordnung der kleinsten Teilchen verstehen, aus denen eine Substanz zusammengesetzt ist, so liegt das Grunderfordernis für die Existenz einer Struktur in der gegenseitigen Gruppierung bestimmter Teilchen. Nur wo sich gewisse Teilchen gegenseitig gruppieren, kann von einer Struktur die Rede sein. Diese Forderung ist aber nicht bloß im festen Körper erfüllt, sondern auch in der Flüssigkeit: denn auch in der Flüssigkeit ordnen sich die einzelnen Teile untereinander in bestimmter Weise. Der Unterschied in der Struktur der Flüssigkeiten und festen Körper liegt lediglich darin, daß die Teilchen in einem festen Körper sich infolge der Molekularattraktion (Kohäsion) nur innerhalb beschränkter Grenzen um einen Schwingungsmittelpunkt herum bewegen, während sie sich in einer Flüssigkeit fortwährend aus ihrer Lage losreißen und fortbewegen. Dazwischen liegen alle möglichen Zwischenstufen. Die interessanten Untersuchungen von O. LEHMANN[731] über flüssige Kristalle haben in dieser Beziehung sehr viel Material geliefert, das auch in biologischer Beziehung Interesse verdient. In Wirklichkeit besteht schon in jeder einfachen Lösung eine gewisse Molekularstruktur. Legen wir z. B. in ein Gefäß mit destilliertem Wasser einen reinen Salzkristall, so löst sich derselbe nach einiger Zeit auf, und die Salzmoleküle verteilen sich durch Diffusion gleichmäßig in der Flüssigkeit, so daß in jedem kleinsten Volumen der Flüssigkeit der gleiche Prozentsatz an Salzmolekülen enthalten ist. Es tritt also eine bestimmte Anordnung unter den Molekülen des Salzes und denen der Flüssigkeit ein, und jedes Salzmolekül gruppiert um sich eine bestimmte Anzahl von Wassermolekülen. Der Unterschied in dieser Gruppierung oder Struktur zwischen der beweglichen Flüssigkeit und dem festen Körper ist nur der, daß bei der freien Bewegung der Moleküle in der Flüssigkeit fortwährend Moleküle aus dieser Gruppierung herausgerissen und durch andere verdrängt werden, so daß die Struktur fortwährend zerstört und wieder neu gebildet wird, während sie im festen Körper, wo die Bewegung der Moleküle eine beschränkte ist, dauernd ungestört bestehen kann. Diese fortwährende Neubildung der Struktur in der Flüssigkeit ist aber von fundamentaler Bedeutung für die lebendige Substanz; denn nur wo die Möglichkeit des fortwährenden Aus- und Eintritts von Molekülen gegeben ist, kann ein Stoffwechsel bestehen, ohne den ja keine lebendige Substanz denkbar ist. Dieser fortwährende Wechsel der Moleküle verhindert indessen nicht, daß auf Grund der betreffenden Molekül- und Atomgruppierungen in der lebendigen Substanz an gewissen Stellen dauernde Formdifferenzierungen zustandekommen. Ebenso wie ein Wasserstrahl oder eine Gasflamme dauernd eine ganz bestimmte Form haben kann, obwohl es in keinem Augenblick dieselben Moleküle sind, welche die Form bilden, wie im Augenblick vorher, ebenso kann auch die lebendige Substanz trotz ihrer flüssigen Natur gewisse dauernde Formdifferenzierungen zeigen, die so lange bestehen, wie die Bedingungen für die bestimmte Gruppierung der Moleküle und Atome die gleichen bleiben.
Diese Ueberlegung ist von großer Wichtigkeit, denn sie eröffnet uns das Verständnis für die allgemeinen Prinzipien der Formbildung der lebendigen Substanz. Die anscheinend paradoxe Tatsache, daß die lebendige Substanz, obwohl sie in fortwährendem Wechsel ihrer Stoffe begriffen ist, dennoch in vielen Fällen eine dauernde und oft außerordentlich komplizierte Form besitzen kann, erklärt sich hiernach ohne weiteres. Denken wir uns z. B. eine Zelle mit verschiedenartigen Differenzierungen, etwa eine Zelle, die, wie das Geißelinfusorium Poteriodendron, außer ihrem Kern noch eine Geißel und einen kontraktilen Myoidfaden besitzt (Fig. 296), so sind hier in jeder der einzelnen Differenzierungen die Teilchen in besonderer Weise angeordnet, im Kern anders als an der Oberfläche des Protoplasmas, in der Geißel anders als im Myoidfaden etc. Aber dennoch treten einerseits aus allen diesen einzelnen Differenzierungen fortwährend Atome und Atomgruppen in bestimmter Richtung aus, und anderseits treten in die Differenzierungen fortwährend neue Atome und Moleküle hinein, so daß die Struktur ununterbrochen zerstört und wieder gebildet wird. Es ist also ein fortwährender Stoffstrom da, der äußerst kompliziert, in den verschiedenen Differenzierungen verzweigt und in seinen Teilen ganz verschieden zusammengesetzt ist. Dieser Stoffstrom ist der Ausdruck der komplizierten Stoffwechselbeziehungen zwischen den einzelnen Teilen des Zellkörpers, und er ist es, der gerade diese eine, ganz bestimmte, eigentümliche Form einer gegebenen Zelle bedingt. Nur wenn bestimmte Atome immer wieder zur rechten Zeit an der nötigen Stelle sind, kann sich die Struktur immer wieder herstellen und dauernd erhalten. Hört der Stoffstrom auf, so zerfallen die Moleküle, und die bestimmte Gruppierung löst sich auf. Solange dagegen der Stoffstrom ununterbrochen dauert, so lange fügen die einzelnen Moleküle und Atome durch Anziehung immer wieder die nötigen Teilchen ein, und die Struktur bleibt bestehen; ändert sich aber der Stoffstrom in Richtung und Zusammensetzung seiner Teilchen, so muß sich auch die Form der Zelle und ihrer Differenzierungen ändern, und wir haben eine Entwicklung.
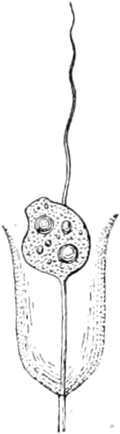
Fig. 296.
Poteriodendron
. Ein einzelnes Individuum eines Stockes. Der Zellkörper sitzt, auf einem Myoidfaden befestigt, in einem glockenförmigen Kelch und schlägt mit seiner Geißel.
Den Vergleich der Lebensäußerungen mit einer Flamme haben wir schon in mehrfacher Hinsicht als sehr treffend erprobt. Auch hier ist er geeignet, uns das Verhältnis zwischen Formbildung und Stoffwechsel in besonders anschaulicher Weise klar zu machen. Die Schmetterlingsfigur einer Gasflamme hat eine sehr charakteristische Formdifferenzierung. Im unteren Teil der Flamme herrscht völlige Dunkelheit, darüber erhebt sich schmetterlingsflügelartig ausgebreitet die helle leuchtende Fläche. Diese eigentümliche Form der Flamme mit ihrer charakteristischen Differenzierung, die dauernd bestehen bleibt, solange wir die Stellung des Gashahns und die Verhältnisse der Umgebung nicht verändern, rührt lediglich davon her, daß an den einzelnen Stellen der Flamme die Gruppierung der Leuchtgas- und Sauerstoffmoleküle eine ganz bestimmte ist, obwohl die Moleküle selbst in jedem Zeitdifferential wechseln. Der Stoffwechsel der Flamme zwischen dem zuströmenden Gase und der umgebenden Luft ist aber so geregelt, daß an derselben Stelle immer wieder dieselben Moleküle in derselben Zahl zusammentreffen. Infolgedessen behalten wir auch dauernd dieselbe Flammenform mit ihrer Differenzierung. Aendern wir aber den Stoffstrom ab, indem wir weniger Leuchtgas ausströmen lassen, so ändert sich auch die Form der Flamme, weil jetzt mit dem Gasdruck die gegenseitige Lagerung der Leuchtgas- und Sauerstoffmoleküle verändert wird. So liefert uns die Betrachtung der Leuchtgasflammenform bis in die Einzelheiten genau dieselben Verhältnisse, wie wir sie für die Formbildung der Zelle als maßgebend gefunden haben.
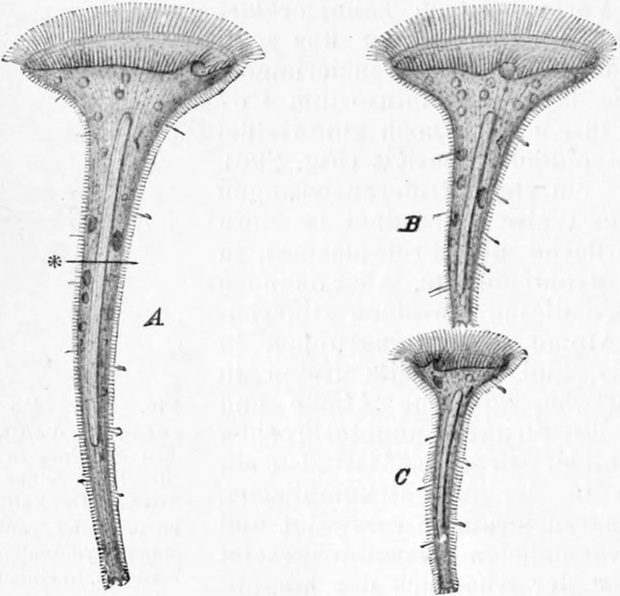
Fig. 297.
Stentor Roeselii
.
A
Quer zerschnitten.
B
und
C
Die beiden Teilstücke haben sich zu vollständigen Stentoren regeneriert. Die helle, langgestreckte Masse im Innern bezeichnet den Kern.
Eine andere interessante Gruppe von Formbildungsvorgängen wird unter diesen Gesichtspunkten ebenfalls klar, das sind die Tatsachen der Regeneration. Schneiden wir eine Zelle, am besten eine mit recht charakteristischen Oberflächendifferenzierungen versehene Infusorienzelle, wie sie z. B. der zierliche Stentor Roeselii vorstellt, in zwei Stücke, aber so, daß jedes Stück einen Teil des Kerns mitbekommt und somit noch den Wert einer Zelle besitzt, so regeneriert, wie wir bereits a. a. O.[732] gesehen haben, in kurzer Zeit jedes der beiden Stücke die ihm fehlenden Teile. Die Wundstelle der Teilstücke schließt sich, und der untere Teil der Stentorenzelle ordnet seine Substanz alsbald wieder so um, daß ein neues Peristom mit der charakteristischen Wimperspirale und einer Mundöffnung entsteht, während sich der obere Teil in die Länge zieht, so daß sich ein neues Fußstück entwickelt, mit dem sich der neue Stentor wieder anheftet. So entsteht durch Anlagerung von Teilchen aus dem Innern des Körpers an die Wundstelle aus jedem Teilstück in kurzer Zeit wieder ein vollständiger Stentor (Fig. 297). Diese Tatsache der Regeneration ist jetzt sehr leicht verständlich. Da in den mit Struktur versehenen Formendifferenzierungen der Zelle jedes Teilchen nur ganz bestimmte andere Teilchen anzieht und festhält und bei Absprengung derselben im Stoffwechsel sofort wieder die entsprechenden Teilchen von neuem anzieht und fesselt, so müssen diejenigen Teilchen an der Wundstelle, die durch den Schnitt von ihren Nachbarn getrennt sind, sofort wieder entsprechende Teilchen, wenn sie ihnen zur Verfügung stehen, an sich ziehen und anlagern. Da aber der Stoffwechsel keine tödliche Störung erfahren hat durch die Teilung, werden ihnen nach wie vor durch den Stoffstrom die nötigen Teilchen zugeführt, und so kann sich ein Teilchen nach dem anderen anlagern, wie es die eigentümliche Beschaffenheit eines jeden erfordert. Ist der Stoffwechsel dagegen unheilbar geschädigt worden bei der Teilung, so ist die Regeneration nicht mehr möglich, weil dann die zum Aufbau nötigen Moleküle und Atome nicht mehr produziert und an die nötige Stelle gebracht werden. Deshalb finden wir ganz allgemein ohne jegliche Ausnahme überall die fundamentale Tatsache, daß kernlose Teilstücke einer Zelle, d. h. Teilstücke, bei denen eine tödliche Störung des Stoffwechsels eingetreten ist, obwohl sie unter Umständen noch tagelang Lebensäußerungen zeigen können, dennoch die verlorenen Teile nicht mehr regenerieren.
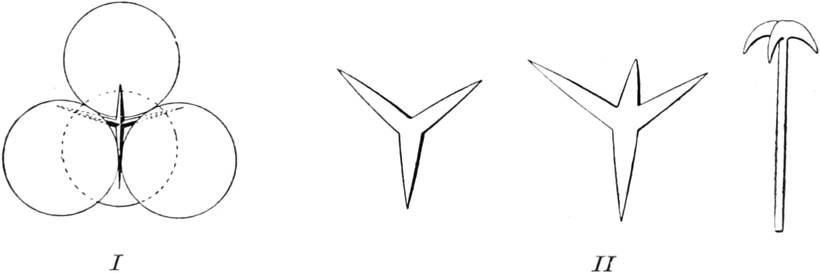
Fig. 298.
Kieselnadeln von Schwämmen
.
I
Schema der Entstehung eines Vierstrahlers zwischen vier blasenförmigen Hohlräumen. Nach F. E. S
CHULZE
.
II
Verschiedene Formen von Kieselnadeln.
Ein Vorgang ferner, der bis in die letzten Jahrzehnte noch ganz rätselhaft erschien, wird durch die Tatsache der Strukturen im Zellprotoplasma dem Verständnis gleichfalls sehr nahe gerückt. Das ist die Bildung der überaus regelmäßig geformten Kiesel- und Kalkskelette, wie sie vor allem bei den zierlichen Radiolarien, Foraminiferen und Spongien vorkommen. Schon F. E. SCHULZE[733] hatte darauf aufmerksam gemacht, daß eine Bildung von Dreistrahlern, Vierstrahlern (Fig. 298 II) etc., wie sie in den Kiesel- und Kalkskeletten der Spongien eine so große Rolle spielt, zustande kommen müsse, wenn sich mehrere kugelige Körper aneinander legen und in die feinen Spalträume zwischen sich eine skelettbildende Substanz, also etwa kohlensauren Kalk oder Kieselsäure, ausscheiden (Fig. 298 I). Freilich dürften in dem speziellen Fall, auf den SCHULZE diese Betrachtung anwendet, nämlich bei der Entstehung der Skelettnadeln der Schwämme, wohl nicht die Faktoren als bestimmende Momente fungieren, die SCHULZE annimmt. Dagegen hat später DREYER[734] für andere Fälle gezeigt, wie verschiedene und zum Teil außerordentlich komplizierte Skelettteile, besonders der Radiolarien, sich leicht auf die Ausscheidung der skelettbildenden Substanz in den protoplasmatischen Wänden eines Vakuolenlagers zurückführen lassen (Fig. 299). Je nach der Form der Vakuolen und der Dicke der Wandschicht, je nach der Ablagerungsstelle und der Menge der sezernierten Skelettsubstanz muß dabei eine ganze Fülle von verschiedenartigen Skelettformen resultieren, wie wir sie tatsächlich in dem Formenreichtum der Radiolarienskelette realisiert finden. So wird die früher so wunderbare Tatsache, daß die einfachen, fortwährend in Strömung und Pseudopodienbildung begriffenen Protoplasmamassen der Rhizopodenzellen so staunenswert regelmäßige, komplizierte und zierliche Skelette zu bilden vermögen, ohne weiteres aus dem Umstande verständlich, daß das Protoplasma der Radiolarienzelle in einer gewissen Körperzone eine vakuolige oder wabige Struktur besitzt. Je nach der Form, der Lage, dem Umfang dieser Vakuolenschicht und ihrer Vakuolen müssen auch die durch Ausscheidung von Skelettsubstanz zwischen den Vakuolen entstehenden Abgüsse, die das Skelett bilden, außerordentlich verschieden sein (Fig. 299). Und eine ähnliche Rolle wie die Vakuolenstruktur des Protoplasmas bei der Bildung mancher Radiolarienskelette wird zweifellos auch die Struktur des Protoplasmas sowie die Form und der gegenseitige Druck der einzelnen Zellen bei der Skelettbildung in anderen Organismen spielen.
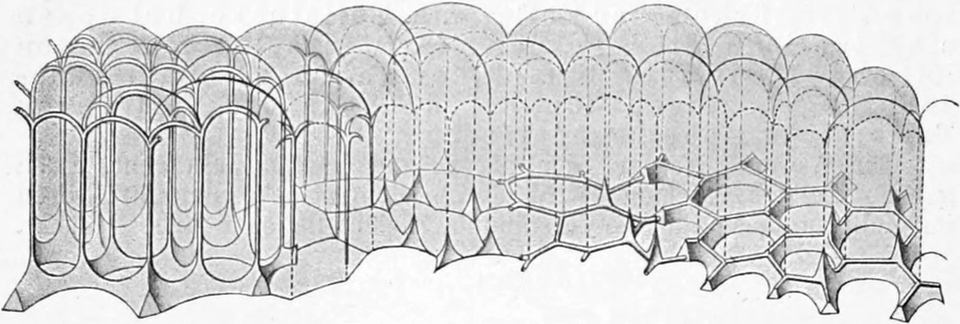
Fig. 299.
Schema der Entstehung verschiedener Skelettformen durch Ausscheidung von Skelettsubstanz in den Wänden eines Vakuolensystems
. Nach D
REYER
.
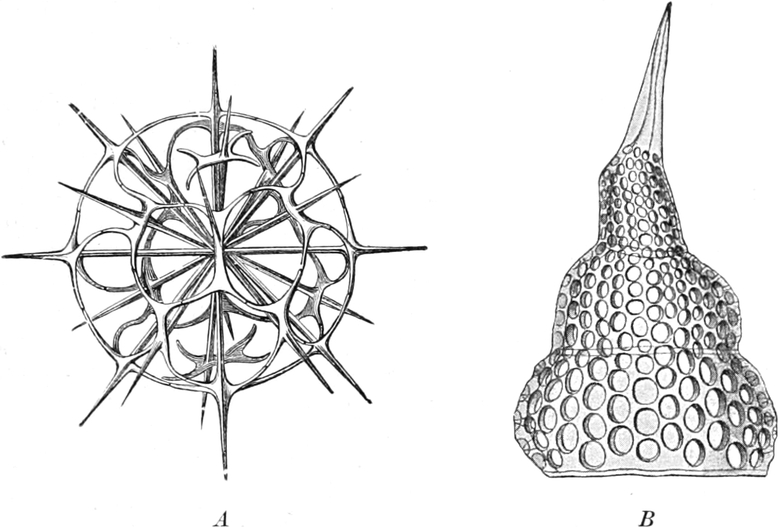
Fig. 300.
Kieselskelette von Radiolarien
. Nach H
AECKEL
.
A
Dorataspis
,
B
Theoconus
.
d) Vererbungsmechanik.
Es bleibt uns schließlich noch übrig, auch kurz auf den Mechanismus der Vererbung einzugehen. Die Verhältnisse der Vererbung liegen am einfachsten bei den niedrigsten einzelligen Organismen, etwa bei den Amöben, bei denen, abgesehen von einer Größenzunahme des Körpers, noch keine eigentliche Entwicklung bemerkbar ist. Hier, wo die Fortpflanzung des Organismus einfach durch Teilung der Zelle in zwei Hälften erfolgt, ist der Vorgang der Vererbung sämtlicher Eigenschaften der Mutterzelle auf beide Tochterzellen ohne weiteres verständlich. Die lebendige Substanz der Mutterzelle mit ihrem charakteristischen Stoffwechsel und ihren eigentümlichen Lebensäußerungen lebt in beiden Tochterzellen selbständig weiter, kein Wunder also, daß die Teilstücke, wenn sie unter denselben äußeren Bedingungen leben, genau dieselben Eigenschaften besitzen, wie sie die ungeteilte Zelle besaß. Allein dieser einfachste Fall der Vererbung zeigt uns die wesentlichsten Momente dieses Vorganges gerade am allerdeutlichsten, wie ja überhaupt alle Lebensäußerungen am klarsten zu übersehen und zu verstehen sind da, wo sie in ihrer einfachsten Form auftreten, d. h. an den einfachsten Zellen. Wir sehen hier, daß die Uebertragung der Eigenschaften von den Vorfahren auf die Nachkommen geschieht durch Uebertragung von lebendiger Substanz, welche die Eigenschaften der Vorfahren besitzt. Daß diese Substanz aber alle Eigenschaften der Vorfahren besitzen kann, ist nur möglich dadurch, daß sie eine vollständige Zelle ist mit allen wesentlichen Bestandteilen derselben. Die charakteristischen Eigentümlichkeiten der Mutterzelle sind der Ausdruck ihres Stoffwechsels. Wenn daher die Eigentümlichkeiten der Mutterzelle auf die Tochterzellen vererbt werden, so ist das nur denkbar, wenn ihr ganzer spezifischer Stoffwechsel vererbt wird, d. h. wenn eine gewisse Menge von allen wesentlichen Bestandteilen, d. h. von Protoplasma und Kern der Mutterzelle auf die Tochterzelle übergeht, denn sonst würde der Stoffwechsel der Tochterzelle nicht dauernd bestehen können, und die Tochterzelle müßte zugrunde gehen. In der Tat sehen wir ja auch nicht bloß bei den einzelligen Organismen, sondern überall in der organischen Natur, wohin wir auch blicken, daß die Vererbung von den Vorfahren auf die Nachkommen ausnahmslos durch Uebertragung einer vollständigen Zelle mit Kern und Protoplasma geschieht.
Wenn wir unter Vererbung die Uebertragung der Eigentümlichkeiten von den Vorfahren auf die Nachkommen verstehen, und wenn die Eigentümlichkeiten eines Organismus lediglich der Ausdruck seiner stofflichen Beziehungen zur Außenwelt sind, so ist der Schluß schlechterdings unabweisbar, daß bei der Vererbung die lebendige Substanz mit ihren eigentümlichen Stoffwechselbeziehungen übertragen werden muß. Das ist aber nur möglich, wenn alle wesentlichen Teile der Stoffwechselkette übertragen werden, sowohl Protoplasma als auch Kernsubstanz, mit anderen Worten: eine ganze Zelle.
So logisch und einleuchtend diese einfache Schlußfolgerung ist, und so vollkommen sie auch durch die tatsächlichen Verhältnisse bestätigt wird, so ist sie doch von seiten der Morphologie, die sich mit dem Problem der Vererbung bisher leider fast allein beschäftigt hat, bis vor kurzem eigentlich nirgends mit Klarheit gezogen worden, und erst in der jüngsten Zeit fängt man auf morphologischer Seite mehr und mehr an, die hier entwickelte Auffassung anzuerkennen, wie die neueren Arbeiten von GODLEWSKI[735] und namentlich RABL[736] erkennen lassen. Im übrigen dagegen hat sich, wie wir gesehen haben, unter den Morphologen, besonders im Anschluß an die Ansichten O. HERTWIGs, STRASBURGERs, WEISMANNs, BOVERIs und anderer, die Vorstellung sehr weit verbreitet, daß die Vererbung der elterlichen Eigenschaften auf die Kinder allein in der Uebertragung von Kernsubstanz durch Ei- und Samenzelle geschehe, und man hat speziell das Nuklein des Zellkerns als die „Vererbungssubstanz“ bezeichnet. Nur wenige unter den Morphologen, wie RAUBER, BERGH und HAACKE, haben sich schon früher gegen diese Auffassung ausgesprochen. Wie uns aber bereits unsere frühere Auseinandersetzung[737] gezeigt hat, sind die Gründe, auf die sich diese Auffassung stützt, nicht geeignet, einer strengeren Kritik standzuhalten. Für den Physiologen ferner ist diese Vorstellung viel zu einseitig morphologisch gedacht, denn sie trägt dem wesentlichsten Moment des Lebens, dem Stoffwechsel, keine Rechnung. Mit dem Gedanken einer bloßen „Vererbungssubstanz“, die irgendwo in der Zelle lokalisiert sein und bei der Fortpflanzung übertragen werden soll, wird sich die physiologische Denkweise niemals befreunden können. Eine Substanz, welche die Eigenschaften einer Zelle auf ihre Nachkommen übertragen soll, muß vor allen Dingen lebensfähig sein, d. h. muß die Fähigkeit eines Stoffwechsels haben, und dieser ist nicht möglich ohne ihren Zusammenhang mit den anderen, zum Stoffwechsel einer Zelle nötigen Substanzen, d. h. ohne die Integrität aller wesentlichen Zellbestandteile. Dann fehlt aber jede Berechtigung, einen einzigen Zellbestandteil als besonders differenzierten Vererbungsträger zu bezeichnen, dann ist das Protoplasma der Zelle genau von dem gleichen Wert für die Vererbung wie der Kern, d. h. beide sind notwendige Bedingungen, und wir müssen immer wieder darauf verweisen, daß in der Tat auch in der ganzen lebendigen Natur kein Fall bekannt ist, in dem nicht stets eine vollständige Zelle mit Kern und Protoplasma die Vererbung vermittelte.
Was den Charakter einer jeden Zelle bestimmt, ist ihr eigentümlicher Stoffwechsel. Sollen also die Eigentümlichkeiten einer Zelle vererbt werden, so muß ihr charakteristischer Stoffwechsel vererbt werden, und das ist nur denkbar, wenn Kernsubstanz und Protoplasma mit ihren Stoffbeziehungen auf die Tochterzellen übertragen werden. Das gilt von der geschlechtlichen Fortpflanzung der höheren Tiere ebenso wie von der ungeschlechtlichen Fortpflanzung der einzelligen Organismen; nur wird bei der geschlechtlichen Fortpflanzung der Stoffwechsel zweier Zellen, der Ei- und Samenzelle, durch den Befruchtungsvorgang komponiert zu einer einzigen Resultante, dem Stoffwechsel der Nachkommen, die aus der befruchteten Eizelle hervorgehen und daher Charaktere von beiden Eltern besitzen.
Der Mechanismus der speziellen Vorgänge aber, die sich abspielen vom Beginn der Entwicklung der Eizelle bis zur vollendeten Reproduktion eines Organismus von der gleichen Art, wie der, von dem die Eizelle abstammt, entzieht sich in seinen einzelnen Momenten bisher noch völlig unserer Kenntnis und wird auch nur in dem Maße genauer erkannt werden, wie sich unser Einblick in den eigentlichen Lebensprozeß, d. h. in das chemische Getriebe des Stoffwechselmechanismus, vertieft.
3. Die Mechanik des Energieumsatzes in der Zelle.
Die dritte Seite, nach der die Veränderungen eines Körpers untersucht werden können, ist neben dem Wechsel des Stoffes und der Form der Wechsel der Energie. Alle drei sind voneinander untrennbar und stellen den Ausdruck alles Geschehens in der Welt vor. Wäre eins der drei bis in die letzten Einzelheiten hinein gegeben, so wären damit die beiden anderen bestimmt. Das gilt von den lebendigen Körpern ebenso wie von den leblosen, denn beide gehorchen den gleichen Gesetzen.
a) Energiekreislauf in der organischen Welt.
Vom Energiewechsel des lebendigen Organismus sind uns leider bisher nur Bruchstücke bekannt. Die Anfangs- und Endglieder sind uns gegeben; aber zwischen beiden liegen die mäandrischen Wege, welche die Energie auf ihrem Durchgang durch die lebendige Substanz verfolgt, und von diesen Wegen sind bis jetzt nur kleine Strecken erschlossen worden. Allein so viel liegt auf der Hand: der Energiewechsel ist im Speziellen ebenso mannigfaltig, wie der Stoffwechsel und Formwechsel, und jede Zellform ist ebenso durch einen ganz spezifischen Energieumsatz charakterisiert, wie sie sich durch einen ihr eigentümlichen Stoffwechsel und eine ihr spezifische Formbildung auszeichnet. Dennoch können wir in großen Zügen einige fundamentale Tatsachen des organischen Energiewechsels schon jetzt skizzieren.
Da die grüne Pflanzenzelle diejenige Form der lebendigen Substanz ist, die gewissermaßen die Grundlage des jetzigen Lebens auf der Erdoberfläche vorstellt, insofern sie das Laboratorium ist, in dem aus anorganischen Stoffen organische Verbindungen hergestellt werden, die für alle übrigen Organismen eine notwendige Lebensbedingung sind, so muß sich bei der Feststellung des allgemeinen Energiekreislaufs in der lebendigen Natur unsere Aufmerksamkeit auf die grüne Pflanze lenken, als den Ausgangspunkt für den Eintritt der Energie in die lebendige Körperwelt.
Diejenige Form, in der die Energie in die grüne Pflanzenzelle eingeführt wird, liefert vorwiegend die Energie des Sonnenlichts. Chemische Energie wird fast gar nicht in die Pflanze eingeführt; denn die chemischen Stoffe, aus denen die Pflanze ihre lebendige Substanz aufbaut, also die Kohlensäure, das Wasser und die darin gelösten Salze sind Verbindungen, die in dieser Form fast gar keine chemische Energie enthalten. Erst bei Zufuhr von Licht werden durch die Tätigkeit des Chlorophylls in der grünen Pflanzenzelle diese Verbindungen in Stoffe mit potentieller chemischer Energie übergeführt. Erst dadurch, daß z. B. die Kohlensäure CO2 in Kohlenstoff und Sauerstoff gespalten wird, werden die Affinitäten des Kohlenstoffs und Sauerstoffs verfügbar. Zu dieser Spaltung wird aber Energie verbraucht, und die dazu erforderliche Energiemenge wird bestritten allein aus den Energiewerten, die durch das Licht in die Pflanze eingeführt werden. Man hat daher gesagt: alles Leben stammt in direkter Deszendenz vom Sonnenlichte ab, und so wäre der uralten poesievollen Licht- und Sonnenverehrung asiatischer und amerikanischer Völker gewissermaßen ein exakter naturwissenschaftlicher Hintergrund gegeben. Allein die nüchterne wissenschaftliche Ueberlegung zwingt uns doch, dem obigen Satze noch eine Klausel anzuhängen. Daß die Lichtstrahlen der Sonne diejenige Energieform vorstellen, von der alle Energie der lebendigen Welt in letzter Instanz herrühre, diese Vorstellung gilt, wenn man sie überhaupt in dieser Allgemeinheit aussprechen zu dürfen glaubt, jedenfalls nur für die Verhältnisse, wie sie jetzt auf der Erdoberfläche herrschen. Gehen wir aber bis zu den Zeiten zurück, wo die erste lebendige Substanz auf der Erdoberfläche entstand, so werden wir unser Augenmerk zweifellos auf die chemische Energie lenken müssen, als diejenige Energieform, die beim Zusammentritt der einfachsten lebendigen Organismen zuerst in die eben entstehende lebendige Substanz eingeführt worden ist. Freilich stammt unsere lebendige Substanz, wie alle Substanz, mit ihrer Energie zuletzt von der Sonne her, denn unser Erdkörper ist ja nur ein abgesprengter Teil der Sonnenmasse; aber wir werden wohl kaum gerade das Licht als diejenige Energieform betrachten dürfen, welche auf der sich abkühlenden Erde den Zusammentritt derjenigen Verbindungen mit ihren Energiemengen bewirkte, die wir als lebendige Substanz bezeichnen. Ja, in Wirklichkeit ist es auch heute auf der Erde nicht unmittelbar das Licht, das die Spaltung der Kohlensäure und den Zusammentritt der Kohlenstoff-, Wasserstoff- und Sauerstoffatome zum ersten Assimilationsprodukt, zur Bildung der Stärke, bewirkt. Diese Vorstellung, die durch eine ungenaue Ausdrucksweise vielleicht erweckt werden könnte, wäre durchaus falsch. Es ist in Wirklichkeit nur die chemische Energie gewisser Verbindungen der Chlorophyllkörper, die in der grünen Pflanzenzelle die Trennung der Kohlenstoffatome aus dem Kohlensäuremolekül und ihre Vereinigung mit den Wasserstoff- und Sauerstoffatomen zu Stärke vollzieht. Die Energieform der Lichtstrahlen allein kann niemals Kohlensäure spalten, geschweige denn Kohlenstoffatome mit Wasserstoff- und Sauerstoffatomen zu Stärkemolekülen zusammenkoppeln. Die Energie der Lichtstrahlen ist nur insofern unerläßlich, als sie diejenige Energieform ist, die in gewissen Verbindungen der Chlorophyllkörper eine derartige Bewegung der Atome herbeiführt, daß diese mit den Atomen der Kohlensäure in chemische Wechselwirkung zu treten und so die Kohlensäure zu spalten vermögen. Die Energie der Lichtstrahlen wird also erst umgesetzt in chemische Energie, und die chemische Energie der Chlorophyllkörper ist es, welche die Kohlensäurespaltung bewirkt und damit die unabsehbare Kette von Energieumsetzungen hervorruft, die das Leben nicht bloß der Pflanzen, sondern auch der Tiere charakterisieren. Die Rolle des Lichtes ist eine ähnliche, wie die der zugeführten Wärme, die im Pflanzen- wie im Tierkörper zum Leben unentbehrlich ist und dazu dient, die intramolekularen Schwingungen der Atome zu verstärken, so daß die Atome Gelegenheit zu Umlagerungen erhalten. Immer aber ist es die chemische Energie, die diese Umlagerungen unmittelbar bedingt. Es muß also auch in der Pflanze schon chemische Energie in den Chlorophyllkörpern vorhanden sein, und diese wird nur durch Zufuhr und Umwandlung von photischer Energie so beeinflußt, daß sie diese erste, so überaus folgenschwere Spaltung des Kohlensäuremoleküls vollziehen kann. Wo nicht schon lebendige Substanz mit ihrer chemischen Energie vorhanden ist, da kann auch die Zufuhr von Licht kein Leben erzeugen. So wirkt die einstmals in unvordenklicher Zeit bei der Entstehung der ersten lebendigen Substanz in die organische Welt eingeführte chemische Energie noch jetzt in allen lebendigen Organismen fort. Ist es auch immerhin nur eine winzige Menge chemischer Energie, die in der mikroskopischen Eizelle auf die Nachkommen übertragen wird, so vermittelt diese winzige Menge doch die Kontinuität mit der chemischen Energie der lebendigen Substanz, von der sie herstammt, ebenso wie die kleine Menge lebendiger Substanz selbst durchaus notwendig ist, um die Kontinuität der lebendigen Organismen fortzupflanzen. Ohne eine auch noch so kleine Menge lebendiger Substanz mit ihrer chemischen Energie kann kein Leben von einem Organismus auf den anderen übertragen werden, und wenn wir den Energiewechsel eines jetzt auf der Erde lebenden Organismus verstehen wollen, so dürfen wir nie vergessen, die kleine Menge chemischer Energie zu beachten, die jeder Organismus von seinen Vorfahren auf den Lebensweg mit bekommen hat. Ist sie auch noch so klein, so ist sie es doch, die es allein ermöglicht, daß das Leben sich fortpflanzt, denn sie ist es, die gewissermaßen durch fermentartige Wirkung zum stetigen Umsatz immer größerer und größerer Energiemengen den Anstoß gibt und die schließlich die gewaltige Energieentfaltung des erwachsenen Organismus veranlaßt. Sie ist das Anfangskapital, mit dem der sich entwickelnde Organismus zu wirtschaften beginnt, ohne das seine Existenz unmöglich wäre. In diesem Sinne können wir sagen: Diejenige Energieform, aus der sich in letzter Instanz alle Leistungen der Organismenwelt herleiten, ist die chemische Energie. Das zugeführte Licht und die zugeführte Wärme wirken nur dadurch, daß sie chemische Energie disponibel machen.
Es liegt auf der Hand, daß dieser Satz für die Tierwelt in gleichem Maße gilt, wie für die Pflanzenwelt. Aus der ursprünglichen, in der Pflanze verfügbaren chemischen Energie werden nicht nur die mannigfaltigen nach außen hin gehenden Leistungen der Pflanze bestritten, sondern es wird auch eine bedeutende Menge als chemische Energie in den organischen Verbindungen des Pflanzenkörpers aufgespeichert. Die komplizierten organischen Verbindungen aber liefern dem Pflanzenfresser die Nahrung, während das Fleisch des Pflanzenfressers wieder dem Fleischfresser den Lebensunterhalt gewährt. So gelangt also mit der Pflanzennahrung die Energie als chemische Energie in die Tierwelt und liefert die Energiewerte, aus denen sich die Leistungen des durch seine mächtige äußere Energieentfaltung von den Pflanzen so charakteristisch unterschiedenen Tierkörpers herleiten. In der Tat bildet die mit der Nahrung in den Tierkörper eingeführte chemische Energie, abgesehen von der geringen Menge der von außen auf alle Organismen einwirkenden Wärme, die einzige Energiequelle des Tierkörpers. Die Probe auf diesen Satz ist durch die kalorimetrischen Untersuchungen von HELMHOLTZ, DULONG, ROSENTHAL und später besonders durch die sehr genauen Arbeiten von RUBNER[738], in wünschenswertester Weise geliefert worden. Drückt man auf Grund kalorimetrischer Verbrennungen den chemischen Energiewert der Nahrung im Wärmemaß aus, so bekommt man ebensoviel Kalorien, wie das Tier liefert, wenn alle seine Energieproduktion sich lediglich in Wärmeabgabe äußert. Die Differenzen zwischen der Wärmemenge, die durch Verbrennung der Nahrung bis zu chemisch energiefreien Stoffen geliefert wird, und der Wärmemenge, die das Tier bei gleicher Nahrung in der Ruhe produziert, sind bei den Versuchen RUBNERs so gering, daß sie vollkommen innerhalb der unumgänglichen technischen Fehlergrenzen gelegen sind, und wäre es überhaupt noch nötig, in unserer Zeit die Gültigkeit des Gesetzes von der Erhaltung der Energie auch für die lebendige Natur zu beweisen, so würde der beste Beweis dafür in den kalorimetrischen Versuchen RUBNERs gelegen sein.
Mit der Abgabe der Wärme oder mechanischen Arbeit von seiten des Tierkörpers ist der Weg der Energie durch die Organismenwelt beendigt. Chemische Energie, die weiter verfügbar wäre, gibt der Tierkörper, abgesehen von der mit den Geschlechtszellen bei der Fortpflanzung übertragenen Menge, nicht nach außen ab. Die Stoffe, die den Tierkörper verlassen, wie Wasser, Kohlensäure etc., sind sämtlich solche Verbindungen, die in dieser Form keine chemischen Energiewerte mehr besitzen, und es bedarf erst wieder der Einfuhr des Lichts in die grüne Pflanzenzelle, damit diese aus jenen Stoffen verfügbare chemische Energie schaffen kann. So ist der Kreislauf des Energiewechsels zwischen lebendiger und lebloser Natur geschlossen. Das Licht macht in der Pflanzenzelle chemische Energie verfügbar. Aus dieser chemischen Energie stammen alle chemischen, mechanischen, thermischen Leistungen der Pflanze in komplizierter Deszendenz ab. Der Pflanzenfresser nimmt die chemische Energie, die in den organischen Verbindungen der Pflanze aufgespeichert ist, mit der Nahrung in seinen Körper auf und liefert mit den Stoffen seiner Leibessubstanz selbst wieder dem Fleischfresser die unentbehrliche Quelle chemischer Energie, aus der die gesamte thermische und mechanische, im gegebenen Falle auch photische und elektrische Energie sich herleitet, die der Tierkörper als Wärme, als mechanische Energie der Muskelbewegung oder auch als Licht und Elektrizität nach außen hin abgibt. Aus den an chemischer Energie armen Stoffen, der Kohlensäure und dem Wasser aber, die den Tierkörper verlassen, schafft die Pflanzenzelle unter Einwirkung der Lichtstrahlen von neuem chemische Energie, und so beginnt der Kreislauf von vorn.
b) Das Prinzip des chemischen Energieumsatzes in der Zelle.
So klar hiernach das Bild des organischen Energiewechsels in seinen groben Umrissen vor uns liegt, so dunkel sind uns noch die Einzelheiten desselben. Es liegt das nicht allein an unserer lückenhaften Kenntnis des Stoffwechsels in der lebendigen Substanz, sondern zum großen Teil auch an dem noch nicht abgeschlossenen Ausbau, den die allgemeine Energielehre in der Physik und Chemie erfahren hat. Vorgänge, die wir in bezug auf ihre stoffliche Seite bis in die feinsten Einzelheiten hinein kennen, sind in bezug auf ihren Energieumsatz vielfach noch völlig dunkel. So wissen wir z. B. von vielen Arbeitsleistungen, die wir bei chemischen Umsetzungen beobachten, noch gar nicht einmal, ob die dabei freiwerdende mechanische Energie direkt aus Umwandlung chemischer Energie stammt oder erst auf dem Wege durch andere Energieformen, wie Wärme, Elektrizität, osmotische Energie etc., entsteht. Ueberhaupt ist die direkte Umwandlung chemischer Energie in mechanische bisher noch nicht genügend Objekt des Studiums gewesen, so genau und eingehend man dem gegenüber die Umwandlung chemischer Energie in Wärme und Elektrizität untersucht hat. Ja dieser Umstand hat sogar vielfach zu dem Glauben verführt, daß chemische Energie überhaupt nicht direkt in mechanische übergehen könne, sondern nur etwa durch Vermittelung von Wärme, eine Vorstellung, die vollkommen unbegründet ist. Dazu kommt, um eine Verständigung noch zu erschweren, der Umstand, daß die Begriffe der einzelnen Energieformen durchaus nicht fixiert sind, daß z. B. die Ausdrücke: molekulare Energie, mechanische Energie, Oberflächenenergie etc. in sehr verschiedener Weise verwendet werden, ein Umstand, der daraus resultiert, daß die Beziehungen, die zwischen den einzelnen Energieformen obwalten, bisher nur unvollkommen aufgeklärt sind. Demnach liegt es auf der Hand, daß die speziellere Energetik der lebendigen Substanz vorläufig noch eins der dunkelsten Gebiete der Physiologie repräsentiert. Was wir bis jetzt davon wissen, sind nur ganz vereinzelte und unzusammenhängende Tatsachen.
Als feststehend haben wir die allgemeine Tatsache zu betrachten, daß die gewaltigen Leistungen des Organismus alle in letzter Instanz aus chemischer Energie stammen. Damit ist indessen nicht gesagt, daß jede Leistung im Momente ihres Zustandekommens unmittelbar aus chemischer Energie entspringt. Es gibt zahlreiche Leistungen, die erst auf Umwegen aus chemischer Energie entstammen. Für das Pflanzenreich hat PFEFFER[739] dieses Verhältnis besonders beleuchtet. So ist es z. B. sehr häufig, daß beim Stoffwechsel chemische Energie zunächst in potentielle mechanische Energie übergeht und als Spannkraft aufgespeichert wird, um bei bestimmter Gelegenheit erst in die kinetische Energie einer mechanischen Leistung umgesetzt zu werden. Die springenden Früchte und Samen gewisser Pflanzen liefern Beispiele dafür. Die chemische Energie des Wachstums ist hierbei zunächst in Form mechanischer Spannkraft aufgehäuft worden, und diese geht erst bei Berührung der Frucht in lebendige Bewegung über: die Frucht platzt auf und schleudert mit großer Gewalt die Samenkörner heraus. Analoge Fälle der mittelbaren Abstammung einer Leistung aus chemischer Energie gibt es mehrfach in der Pflanzenwelt wie in der Tierwelt. Immerhin aber stammen vielleicht die meisten Leistungen des Organismus unmittelbar aus der Umsetzung chemischer Energie.
Die wesentlichen Leistungen, in denen sich die Energieproduktion der Zelle äußert, zeigen sich in der Erzeugung von mechanischer Energie und Wärmeentwicklung. Die Produktion von Licht und Elektrizität ist viel beschränkter. Die Hauptmasse jeder dieser Energieformen aber stammt, soweit wir bis jetzt wissen, direkt aus der Umformung chemischer Energie, wenn auch die speziellen Umsetzungen, die daran beteiligt sind, vorläufig noch völlig unbekannt bleiben. Wir müssen uns daher, wenn wir überhaupt einen Blick in das Energiegetriebe der Zelle gewinnen wollen, zunächst an das Hauptgesetz erinnern, das den Energiewechsel bei chemischen Umsetzungen beherrscht, und das wir in dem Satze fanden: Werden bei einem chemischen Prozeß stärkere Affinitäten gebunden als getrennt, so wird Energie für Leistungen verfügbar; werden dagegen stärkere Affinitäten getrennt als gebunden, so verläuft der Prozeß mit Energieverbrauch[740]. Nur wenn wir diese Tatsache fest im Auge behalten, dürfen wir hoffen, allmählich tiefere Einblicke in die Wege des organischen Energieumsatzes zu erlangen.
Das allgemeine Fundamentalprinzip, auf dem der organische Energieumsatz beruht, ergibt sich unter Berücksichtigung dieses Satzes aus den bekannten Tatsachen des Stoffwechsels der lebendigen Substanz bereits mit voller Klarheit: Wir haben in der lebendigen Substanz gewisse Verbindungen mit starken chemischen Affinitäten. In die lebendige Zelle werden von außen her weitere chemische Affinitäten mit der Nahrung und dem Sauerstoff eingeführt. Wir wissen ferner, daß diese eingeführten einfacheren Stoffe verwendet werden zum Aufbau komplizierterer und außerordentlich komplizierter Verbindungen. Dabei geht die chemische Energie, die in die lebendige Substanz eingeführt worden ist, in Form von potentieller Energie mit in diese komplizierten Verbindungen über und hilft das Gefüge derselben lockern. So kommt es, daß das Molekül der hypothetisch von uns angenommenen Biogene eine außerordentlich labile Konstitution gewinnt, d. h. daß seine intramolekulare Wärme sehr groß wird[741]. Infolgedessen neigt das Biogenmolekül zum Zerfall und explodiert teils schon spontan, teils auf geringe äußere Reize hin. Dieser explosive Zerfall beruht auf einer Umlagerung der Atome, wobei im Bereich einzelner Atomgruppen des großen Biogenmoleküls, wie bei allen explosiblen Körpern, stärkere Affinitäten gebunden werden, als vorher im labilen Molekül gebunden waren. Es wird also die Summe aller dissimilatorischen Prozesse im ganzen genommen mit bedeutender Energieproduktion verknüpft sein müssen. Schließlich wissen wir, daß die aus diesem Zerfall des Biogens hervorgehenden Verbindungen, soweit sie den Körper verlassen, wie Kohlensäure, Wasser etc., kaum noch nennenswerte chemische Energiemengen enthalten, während die im Körper zurückbleibenden Verbindungen, die Biogenreste, wieder chemische Affinitäten zu den aufgenommenen Stoffen besitzen, die sie auf Kosten derselben binden. Die dabei verfügbare Energiemenge wird wieder zur Auflockerung der Biogenmoleküle verwendet, und so schließt sich hier die Kette des Energieumsatzes in der lebendigen Substanz. Das ihm zugrunde liegende Prinzip ist danach klar: es ist ein fortwährendes Aufspeichern potentieller chemischer Energie und ein Ueberführen derselben in andere Energieformen; die Quelle der chemischen Energie ist die Nahrung und der Sauerstoff, das Betriebskapital die chemische Energie, die jedes winzige Tröpfchen lebendiger Substanz von seinen Vorfahren überkommen hat, und das Ergebnis sind die energetischen Leistungen der lebendigen Substanz.
Die Energieverhältnisse, die sich bei Einwirkung von Reizen in der lebendigen Substanz entwickeln, werden auf Grund dieses Prinzips in ihren allgemeinen Zügen verständlich. In denjenigen Fällen, in denen wir eine dissimilatorische Erregung als Reizwirkung haben, liegen die Dinge am einfachsten. Es handelt sich ja, wie wir an anderer Stelle sahen[742], dabei nur um eine Steigerung der schon spontan sich vollziehenden Leistungen. Die potentielle Energie, die in den labilen Biogenmolekülen aufgehäuft ist, wird schon spontan in gewissem Maße in aktuelle Energie übergeführt, indem beim dauernden Zerfall die Atome unter Umlagerung durch stärkere Affinitäten aneinander gebunden werden. Daß gewisse äußere Einwirkungen, wie sie die Reize vorstellen, durch Erschütterungen der Atome im Biogenmolekül die intramolekulare Bewegung derselben steigern und dadurch mehr Gelegenheit zu Umlagerungen und zum explosiven Zerfall der Biogenmoleküle geben, ist ohne weiteres verständlich, und so bedarf die Steigerung der Leistungen unter der Einwirkung gewisser Reize weiter keiner Erklärung. Auch diejenigen Fälle der Reizwirkungen, in denen es sich um eine dissimilatorische Lähmung handelt, bedürfen kaum einer weiteren Erörterung, denn alle diejenigen Reize, welche die intramolekulare Bewegung der Atome im Biogenmolekül verringern oder die Umlagerung und Vereinigung bestimmter Atome in irgendeiner Weise hindern, wie etwa die Kälte oder gewisse chemische Stoffe, müssen selbstverständlich auch die normalen Leistungen der Zelle herabsetzen[743]. Allein nicht alle Leistungen der lebendigen Substanz sind mit der dissimilatorischen Phase des Stoffwechsels verknüpft. Manche wichtige Lebensäußerungen laufen gerade mit dem assimilatorischen Aufbau des Biogens Hand in Hand. So werden also assimilatorisch erregende Reize, wie wir sie bisher allerdings nur in der gesteigerten Nahrungszufuhr kennen, derartige Lebensäußerungen steigern, indem sie mehr Gelegenheit für die Bildung neuer Biogenmassen liefern, und umgekehrt werden assimilatorisch lähmende Reize die entgegengesetzte Wirkung hervorrufen. Gerade diejenigen Lebensäußerungen, die mit der assimilatorischen Phase des Stoffwechsels verknüpft sind und durch vermehrte Nahrungszufuhr gesteigert werden, verdienen in Zukunft ein besonderes Interesse, nachdem sie so lange auf Kosten der viel augenfälligeren mit der Dissimilation verbundenen Leistungen vernachlässigt worden sind.
Mit dieser Vorstellung von der Wirkung der Reize ist indessen nicht gesagt, daß die infolge einer Reizung sich an bestimmten Leistungen äußernde Veränderung des Energiegetriebes immer direkt und allein aus der Erregung oder Lähmung dieses oder jenes Gliedes der Stoffwechselkette stammt. So folgt z. B. dem explosiven Zerfall des Biogenmoleküls nach unserer Vorstellung immer die Bildung der freigewordenen Affinitäten des Biogenrestes, d. h. seine Regeneration, auf dem Fuße nach. Wir werden also darauf Rücksicht nehmen müssen, daß unter gewissen Umständen im Reizerfolg nicht bloß die durch den Zerfall der komplizierten Verbindungen frei werdende Energiemenge enthalten ist, sondern daß diese Energiemengen modifiziert werden durch den bei den unmittelbaren Folgevorgängen des Zerfalls stattfindenden Energieumsatz, so daß das Endresultat immer nur die Resultante aus verschiedenen Komponenten repräsentiert. Dasselbe gilt von den anderen Fällen der Reizwirkungen. Das Energiegetriebe in der Zelle ist eben in allen seinen Gliedern außerordentlich eng verkettet. Das geht mit Notwendigkeit aus den früher erörterten Tatsachen des Stoffwechsels hervor. Die ungeheure Schwierigkeit, den feineren Energieumsatz, der bei einer gegebenen Leistung, sei es spontan, sei es auf Reizung hin, abläuft, in seinen Einzelheiten zu verfolgen, liegt demnach auf der Hand, und es ist daher bei den spärlichen Untersuchungen, die bisher auf diesem Gebiete vorliegen, zur Zeit schlechterdings unmöglich, die Energetik auch nur der äußerlich am deutlichsten hervortretenden Leistungen der Zelle, wie ihre Lichtentwicklung, ihre Elektrizitätsproduktion, ihre Entfaltung mechanischer Energie in den verschiedenen Bewegungsformen, bis in ihre einzelnen Komponenten hinein zu analysieren. Die überaus interessanten Vorgänge des Energieumsatzes, der sich in den einzelnen inneren und äußeren Leistungen der lebendigen Zelle abspielt, tiefer zu analysieren, wird daher als eine der anregendsten Aufgaben der künftigen Physiologie vorbehalten bleiben.
c) Die Energiequelle der Muskelarbeit.
Wenn wir sagen müssen, daß bisher über die Mechanik des Energiegetriebes in der lebendigen Substanz im allgemeinen nur spärliche Untersuchungen von der Physiologie angestellt worden sind, so gilt diese Bemerkung von einem Gebiet der Energieproduktion nicht. Das sind die Kontraktions- und Expansionsbewegungen. Vor allem die Mechanik der Muskelkontraktion, bei der die Energieentfaltung der lebendigen Substanz in hervorragendster und erstaunlichster Gewalt zum Ausdruck kommt, hat von alten Zeiten her den Scharfsinn der Physiologen in lebhaftestem Maße beschäftigt, und die Zahl der Theorien, die über die Mechanik der Muskelbewegung aufgestellt worden sind, ist keine geringe. Es ist ein interessantes Stück Entwicklungsgeschichte des menschlichen Denkens, das sich in diesen Theorien von den Zeiten GALENs an bis in unsere Tage hinein widerspiegelt, und es gewährt einen historischen Genuß, diese Theorien von ihren naivsten Anfängen an zu verfolgen. Wer Interesse an diesem Kapitel aus der Geschichte der Physiologie nimmt, der findet die Literatur der älteren und ältesten Theorien bis zum vorigen Jahrhundert zusammengestellt bei HALLER[744]. Die späteren Theorien der Muskelbewegung hat HERMANN[745] in seinem Handbuch der Physiologie im wesentlichen angeführt, und die neueren Anschauungen, soweit sie größeres Interesse besitzen, sind gesammelt und kritisch beleuchtet in einer Arbeit, die das alte Problem von vergleichend-zellularphysiologischer Seite in Angriff genommen hat[746].
Die Muskelarbeit ist zweifellos diejenige Leistung in der ganzen Organismenwelt, bei der in kürzester Zeit der größte Energieumsatz stattfindet. Die Energiemengen, die bei der Muskeltätigkeit frei werden, erreichen bekanntlich ganz erstaunliche Werte. Es liegt daher zunächst die Frage nahe, welches die Quelle für die in der Muskeltätigkeit frei werdenden Energiewerte ist.
Daß es chemische Energie sein muß, liegt auf der Hand, da ja der Tierkörper ausschließlich aus chemischer Energie seine Leistungen bestreitet. Aber die Frage ist, welcher von den in den Körper eingeführten Nahrungsstoffen durch seine Umsetzung die zur Muskeltätigkeit nötige chemische Energie liefert. Sind es die Eiweißkörper, oder sind es die Kohlehydrate und Fette, deren Umsetzung im Körper die Energiequelle für die Muskelarbeit bildet?
Um diese Frage ist ein heftiger Kampf geführt worden. Die ursprüngliche und sehr einleuchtende Lehre LIEBIGs[747], daß das Eiweiß als der Hauptbestandteil des Muskels auch die Quelle seiner Leistungen sein müsse, ist schon zu seinen Lebzeiten befehdet worden, und jahrzehntelang glaubte man die richtige Lösung des Problems gefunden zu haben. Die Beweisführung, die zu dieser bis gegen das Ende des vorigen Jahrhunderts geltenden Vorstellung geführt hatte, ist interessant genug. Man hatte nämlich folgende Ueberlegung angestellt: Liegt die Quelle der Muskelkraft in der Zersetzung des Eiweißes, so muß bei angestrengter Muskeltätigkeit der Eiweißumsatz gesteigert sein. Da man nun in der Stickstoffausscheidung durch den Harn einen absoluten Maßstab für den Umfang des Eiweißumsatzes im Körper zu besitzen glaubte, so schien die Frage entschieden zu sein, wenn man den Stickstoffgehalt im Harn bei der Ruhe und bei angestrengter Muskeltätigkeit miteinander verglich. War er bei der Arbeit bedeutend erhöht, so konnte das nur von dem vermehrten Eiweißumsatz herrühren; war er der gleiche, so war die Quelle der Muskelkraft nicht im Eiweiß, sondern in den stickstofffreien Nahrungsstoffen zu suchen. Das Problem war also in schärfster Weise zugespitzt, und so konnte die Entscheidung nicht auf sich warten lassen. FICK in Gemeinschaft mit WISLICENUS[748] zeigten an sich selbst und VOIT[749] am Hunde, daß die Stickstoffausscheidung im Harn auch bei der größten Muskelanstrengung nicht bemerkenswert gesteigert wird.
Damit schien die Frage in exaktester Form gelöst. Man schloß, daß die Eiweißzersetzung nicht die ausschließliche Quelle der Muskelkraft sein könne. Von den stickstofffreien Nahrungsstoffen kommen vor allem die Kohlehydrate und eventuell auch die Fette in Betracht, und in der Tat ist bekannt, daß bei angestrengter Muskeltätigkeit das im Muskel aufgespeicherte Glykogen verschwindet, um sich erst wieder in der Ruhe anzuhäufen. So wurde infolge dieser scheinbar durchaus einwandsfreien Beweisführung die Ansicht allgemein angenommen, daß die Quelle der Muskelkraft hauptsächlich in der Zersetzung der Kohlehydrate gelegen sei.
Allein die Vorstellung, daß das Eiweiß bei der angestrengten Tätigkeit der Muskelzelle nicht in erster Linie beteiligt sein soll, mußte jemandem, der mit den allgemeinen Lebenseigenschaften der lebendigen Substanz etwas näher vertraut war, überaus paradox erscheinen. Das Eiweiß ist derjenige Körper, mit dessen Bildung und Zersetzung das Leben untrennbar verknüpft ist, und so mußte es sehr wunderbar sein, daß bei einer gesteigerten Lebenstätigkeit, wie sie die angestrengte Muskelbewegung vorstellt, der Eiweißumsatz der gleiche sein sollte, wie in der Ruhe. So konnte sich auch PFLÜGER nie mit dieser Ansicht befreunden. In einer Reihe von ausgezeichneten Arbeiten eröffnete er in neuerer Zeit, gestützt auf einwandsfreie Versuche, gegen die bisher allgemein verbreitete Vorstellung einen Feldzug, in dem er die Zersetzung des Eiweißes als die Hauptquelle der Muskelkraft hinzustellen suchte. Daß sich Hunde mit Fleischnahrung allein erhalten lassen, war schon VOIT bekannt. PFLÜGER[750] fütterte daher einen Hund viele Monate hindurch allein mit möglichst reinem und fettfreiem Fleisch und ließ ihn mehrmals wochenlang jeden Tag die schwerste Arbeit verrichten. Dabei zeigte das Tier dauernd „eine ganz außerordentliche Stärke und Elastizität in allen Bewegungen“. Da die geringen im Fleisch enthaltenen Spuren von Kohlehydraten und Fett schlechterdings für die Ernährung nicht in Betracht kommen, so war damit bewiesen, daß die ganze in der schweren Arbeit des Hundes produzierte Energie aus der Umsetzung von Eiweiß stammte. Um aber zu prüfen, ob etwa das Eiweiß nur bei Mangel an Kohlehydraten und Fetten in der Nahrung als Ersatzquelle für die Muskelkraft diene, stellte PFLÜGER[751] Versuchsreihen mit gemischter Nahrung an, und diese führten ihn zu dem Ergebnis, daß bei einer aus Eiweiß, Kohlehydraten und Fetten gemischten Kost die Menge von Kohlehydraten und Fetten, die im Stoffwechsel zersetzt wird, ganz allein davon abhängt, ob viel oder wenig Eiweiß gefüttert wird. „Allgemein ist die Menge des zur Zersetzung gelangenden Kohlehydrates und Fettes um so kleiner, je größer die Eiweißzufuhr gemacht wird.“ Die nicht zersetzten Mengen der Kohlehydrate und Fette werden in Körperfett umgewandelt und als Reservematerial im Körper aufgehäuft, während, wie bekannt, das eingeführte Eiweiß, wie viel es auch sei, bis auf einen verschwindend geringen Rest sämtlich zersetzt wird. PFLÜGER sagte daher: „Das Nahrungsbedürfnis wird in erster Linie durch Eiweiß befriedigt.“ Das Eiweiß bildet die „Urnahrung“, die Kohlehydrate und Fette nur eine „Ersatznahrung“ bei Eiweißmangel.
Wenn es nach alledem zweifellos feststeht, daß die Muskelarbeit gänzlich durch die Zersetzung von Eiweiß bestritten werden kann, so muß die ebenso unumstößliche Tatsache, daß die Stickstoffausscheidung im Harn bei der angestrengtesten Muskeltätigkeit nicht entsprechend erhöht ist, zunächst Befremden erregen. In dieser Beziehung verdient ein anderer Versuch PFLÜGERs Beachtung. PFLÜGER fand nämlich, daß auch bei reiner Eiweißnahrung und bei gleichem Kostmaß in der Ruhe und in der Arbeit die Stickstoffausscheidung durch die Muskeltätigkeit nur ganz unbedeutend, ja unter Umständen überhaupt nicht vermehrt wird. Und dennoch mußte die gesamte Arbeitskraft allein aus der Zersetzung von Eiweiß stammen, da keine Kohlehydrate und Fette verfüttert wurden. Dieses merkwürdige Ergebnis wäre bei Ueberschuß an Eiweißnahrung zwar ohne weiteres verständlich, wenn wir daran denken, daß ja schon in der Ruhe alles über ein bestimmtes Maß hinaus in den Körper eingeführte Eiweiß zersetzt wird. Wenn daher, wie sich gezeigt hat, die Energie der Muskelarbeit trotzdem aus dem zersetzten Eiweiß stammen muß, so könnte man daraus schließen, daß das Eiweiß, das bei der Tätigkeit verbraucht wird, an anderen Punkten gespart worden sei, und das wäre um so begreiflicher, als wir wissen, daß alles über ein bestimmtes Maß hinaus genossene Eiweiß gewissermaßen eine Luxuskonsumption vorstellt und daher jeden Augenblick, sobald Bedürfnisse auftreten, für diese zur Verfügung steht. Wenn wir aber sehen, daß, wie VOIT[752] gezeigt hat, auch im Hungerzustande des Hundes durch die Arbeit im Tretrade die Stickstoffausscheidung im Harn entweder gar nicht oder nur unwesentlich vermehrt ist, dann können wir diesen Schluß nicht ziehen, und die obige Erklärung reicht nicht mehr aus.
Dann bleibt uns noch eine Möglichkeit übrig, eine Möglichkeit, die PFLÜGER nur gestreift hat: das ist die Vorstellung, daß bei der Arbeit ein Eiweißumsatz im Muskel stattfindet, ohne daß der Stickstoff des umgesetzten Eiweißes im Harn zur Ausscheidung kommt.
In der Tat ist diese Vorstellung, zu der wir hier durch die Tatsachen gedrängt werden, wenn sie auch einem althergebrachten Dogma in der Physiologie direkt widerspricht, durchaus nicht so paradox, wie sie auf den ersten Blick erscheint. Dieses Dogma, das den Fortschritt in der Erkenntnis der Lebensvorgänge nicht wenig gehemmt hat, und das nur entstehen konnte, weil man sich bisher ausschließlich mit den Lebensäußerungen der höheren Tiere beschäftigt hat, besteht in dem Satz, daß die Stickstoffausscheidung im Harn ein absolutes Maß für den Eiweißumsatz im Körper sei. Aber eine solche Annahme ist wenigstens in dieser Form durchaus unerwiesen[753]. Mit voller Berechtigung können wir zwar sagen: der im Harn ausgeschiedene Stickstoff stammt aus der Zersetzung des Eiweißes oder seiner Derivate; wenn wir aber umgekehrt behaupten: der gesamte Stickstoff der im Körper umgesetzten Eiweißverbindungen wird im Harn ausgeschieden, so haben wir dazu nicht das mindeste Recht, denn die Tatsache, daß alles über ein gewisses Maß genossene Nahrungseiweiß im Körper in solche Atomgruppen umgesetzt wird, deren Stickstoff durch den Harn zur Ausscheidung gelangt, gestattet keine Verallgemeinerung, vor allen Dingen keine Uebertragung auf den Zerfall des Zelleiweißes, des Biogens. Hier liegt der Punkt, an dem bisher nicht scharf genug unterschieden worden ist. Man hat, wenn man von der Quelle der Muskelkraft sprach, nicht immer hinreichend das tote Eiweiß der Nahrung und das Zelleiweiß oder wie wir sagen, das Biogen der lebendigen Substanz begrifflich auseinander gehalten. Tun wir das aber, so zerrinnt der ganze lange Streit bei genauerer Betrachtung in nichts.
Wie wir sahen, entstehen beim Zerfall des Biogenmoleküls stickstofffreie und stickstoffhaltige Atomgruppen. Die stickstofffreien, wie Kohlensäure, Wasser, Milchsäure etc., verlassen alsbald den Körper. Aber nichts zwingt uns zu der Annahme, daß auch die stickstoffhaltigen Atomgruppen sämtlich den Körper verlassen. Die Tatsachen zwingen uns vielmehr zu der Annahme, daß der stickstoffhaltige Biogenrest, der beim Zerfall des Biogenmoleküls nach Austritt der Kohlensäure, des Wassers etc. übrig geblieben ist, unter Umständen sich auf Kosten der Nahrungsstoffe oder im Hunger auf Kosten der Reservestoffe wieder zu einem vollständigen Biogenmolekül regeneriert. Dann hätten wir einen Biogenzerfall, der keine Stickstoffausscheidung im Harn zur Folge hat. Es gibt aber keine einzige Tatsache, die dagegen spräche, daß bei der Muskeltätigkeit das Biogenmolekül zerfällt, und daß der stickstoffhaltige Rest die verloren gegangenen stickstofffreien Atomgruppen auf Kosten der Nahrung immer wieder regenerierte. Eine solche Sparsamkeit gerade mit dem kostbaren Stickstoff würde im Gegenteil ganz im Sinne des organischen Haushaltes liegen.
Diese Vorstellung, die uns hier zunächst als bloße Möglichkeit entgegentritt, auf die wir durch die Erfahrungen hingewiesen werden, gewinnt aber bei genauerer Betrachtung außerordentlich an Wahrscheinlichkeit.
Vor allem nämlich steht sie im Einklang mit unseren allgemeinphysiologischen Ansichten vom Wesen des Lebensprozesses und wird den Vorstellungen gerecht, die wir uns von den Vorgängen in der lebendigen Substanz auf Grund zahlloser Tatsachen machen müssen. Wie wir wissen, bilden die Körper der Eiweißgruppe nicht nur die Hauptmasse aller Stoffe, aus denen die lebendige Substanz besteht, sondern sie sind auch die einzigen von allen organischen Stoffen, aus deren Umsatz allein sämtliche Leistungen des lebendigen Organismus dauernd bestritten werden können. Dazu kommt, daß, wie wir schon früher sahen[754], alle anderen Stoffe, die sich sonst noch in der Zelle finden, teils zum Aufbau der Eiweißkörper und Biogene dienen, teils aus dem Umsatz derselben entstehen. Es ist also eine im höchsten Grade wahrscheinliche Arbeitshypothese, daß das Leben auf das engste an den Aufbau und den Zerfall gewisser hochkomplizierter Eiweißverbindungen gebunden ist, die wir eben deshalb als „Biogene“ bezeichneten. Gibt man das zu, dann wäre es aber äußerst paradox, wenn eine Steigerung, und zwar eine so enorme Steigerung der Lebensprozesse, wie sie bei angestrengter Muskeltätigkeit zum Ausdruck kommt, nicht auch notwendig mit einer Steigerung des Biogenumsatzes im Körper verbunden sein sollte. Deshalb glaubte auch LIEBIG, der Altmeister der physiologischen Chemie, bis an sein Lebensende unermüdlich die Ansicht vertreten zu müssen, daß die Eiweißkörper, welche die Hauptmasse der organischen Muskelbestandteile bilden, welche die Hauptrolle im ganzen Lebensprozeß spielen, diejenigen Stoffe sind, deren Zersetzung die Quelle der Muskelkraft liefert, und deshalb bekämpft auch PFLÜGER, einer der weitestblickenden unter den Physiologen, heute wieder von neuem die Vorstellung, daß die Muskeltätigkeit ohne Zerfall der Eiweißkörper bestehen könne. Wenn aber bei der Muskeltätigkeit ein gesteigerter Biogenumsatz stattfindet, und wenn trotzdem bei der Muskeltätigkeit nicht mehr Stickstoff ausgeschieden wird als in der Ruhe, dann bleibt eben nichts anderes übrig als der Schluß, daß der stickstoffhaltige Biogenrest sich wieder zum vollständigen Biogenmolekül regeneriert. In der Tat sind auch ohne ein solches Regenerationsvermögen des Biogenmoleküls die einfachsten und allgemeinsten Lebensäußerungen nicht zu verstehen. Wie wäre zum Beispiel die Tatsache des Wachstums, die Tatsache, daß lebendige Substanz immer nur von anderer lebendiger Substanz gebildet wird, anders zu begreifen als dadurch, daß das Biogenmolekül die Fähigkeit hat, nach und nach bestimmte Atome und Atomgruppen an sich zu binden, um so zu einem polymeren Molekül anzuwachsen. Jede Regeneration ferner beruht im Prinzip auf denselben Vorgängen wie jede neue Bildung. Auch die Tatsache der vollkommenen Erholung nach gänzlicher Ermüdung und manche andere Grundtatsache der lebendigen Substanz setzt unbedingt die Regenerationsfähigkeit des Biogenmoleküls voraus.
Was aber besonders wichtig ist, das ist, daß die hier entwickelte Vorstellung beiden sich unversöhnt gegenüberstehenden Auffassungen über die Quelle der Muskelkraft, soweit man die Nahrungsstoffe dabei im Auge hat, gerecht wird. Sowohl die Eiweißkörper wie auch die Kohlehydrate der Nahrung können nach dieser Auffassung als Quelle für die Muskelkraft dienen. Wenn die unmittelbare Energiequelle der Muskeltätigkeit in dem Zerfall und Wiederaufbau des Biogenmoleküls gelegen ist, und wenn beim Zerfall nur stickstofffreie Atomgruppen das Molekül verlassen, so ist es selbstverständlich, daß auch zur Regeneration nur stickstofffreie Atomgruppen verwendet werden, und die Tatsachen beweisen, daß dazu sowohl die Eiweißkörper als auch die Kohlehydrate der Nahrung dienen können, wenn auch, wie PFLÜGER gezeigt hat, bei gemischter Nahrung und genügender Eiweißzufuhr das Eiweiß den Vorzug erhält. So ist die unbestreitbare Tatsache, daß auch bei starker Muskeltätigkeit die Eiweißnahrung bis zu einem gewissen Grade durch Kohlehydrate vertreten werden kann, ohne weiteres verständlich, und es ist ebenso berechtigt, zu sagen: die Kohlehydrate der Nahrung liefern die Quelle der Muskelkraft, wie zu behaupten: die Eiweißkörper der Nahrung leisten diesen Dienst. Beide können dieselbe Rolle spielen, aber eben nur dadurch, daß sie dem Biogenrest die stickstofffreien Atomgruppen zu seiner Regeneration zur Verfügung stellen, denn der funktionelle Stoffwechsel erstreckt sich nur auf die stickstofffreien[755] Seitenketten des Biogenmoleküls, nicht auf den stickstoffhaltigen Kern. Aber immer liegt die Energiequelle des Muskels im funktionellen Zerfall des Biogenmoleküls und bleibt dieselbe, ob der Muskel sein Material für die Regeneration des Biogenrestes aus dem Eiweiß oder aus dem Kohlehydrat und Fett der Nahrung bezieht.
Die hier erörterte Auffassung, nach der die Energieentfaltung bei der Muskelbewegung aus dem funktionellen Zerfall und Wiederaufbau des Muskelbiogens stammt, besitzt den höchsten Grad von Wahrscheinlichkeit, den eine wissenschaftliche Erklärung haben kann. Sie entspringt den Forderungen unserer allgemein-physiologischen Erfahrungen, sie ist imstande, alle bekannten Tatsachen verständlich zu machen, und steht mit keiner einzigen Tatsache im Widerspruch.
Ihr Wert wird sich auch zeigen, wenn wir das Problem der spezielleren Energiewechselmechanik bei der Bewegung der kontraktilen Substanzen etwas näher ins Auge fassen.
d) Theorie der Kontraktions- und Expansionsbewegungen.
Ohne auf die schier zahllosen Theorien, die über den Mechanismus der Muskelkontraktion aufgestellt worden sind, im einzelnen einzugehen, können wir unter den wichtigeren der in der neueren Physiologie geäußerten Auffassungen zwei wesentlich verschiedene Gruppen bemerken. Daß es die chemische Energie ist, welche die Quelle für die Muskelleistungen liefert, darüber herrscht allgemeine Einstimmigkeit, und kann auch nach unseren Vorstellungen über den Lebensvorgang kein Zweifel bestehen. Während aber nach der Meinung einiger Physiologen die mechanische Energie der Muskelarbeit direkt aus dem Umsatz chemischer Energie hervorgeht, wird nach der Ansicht anderer die chemische Energie bei der Muskelkontraktion erst auf dem Umweg durch Wärme in mechanische Energie übergeführt. Die erstere Ansicht wird von PFLÜGER[756], FICK[757] und anderen[758] vertreten, die letztere besonders von ENGELMANN[759].
Wir wählen zum Ausgangspunkt für unsere Betrachtung am besten ENGELMANNs thermo-dynamische Theorie der Kontraktionsbewegungen. ENGELMANN sieht eine Schwierigkeit bei der direkten Herleitung der Muskelarbeit aus chemischer Energie in folgendem Umstand. Berechnet man aus der vom Muskel produzierten Energiemenge auf Grund der Annahme, daß dieselbe durch Verbrennung von Kohlehydraten geliefert werde, unter Zugrundelegung einer Verbreitungswärme von rund 4.000 Kalorien pro Gramm Kohlehydrat, die Menge von Substanz, die für die Leistung des Muskels bei einer Zuckung nötig ist, so findet man, daß sie eine ganz erstaunlich geringe ist im Verhältnis zur Masse des Muskels. ENGELMANN berechnet, daß nur etwa ein Viermillionstel der ganzen Masse als Quelle für die bei einer Zuckung gelieferte Energie in Betracht kommen kann. Bei dem großen Wassergehalt der Muskeln, den er auf etwa 70–80 Proz. annimmt, hält er es daher für unverständlich, wie durch die direkte Wirkung der nur am Orte wirkenden chemischen Energie einer so geringen Menge von wirksamer Substanz eine so ungeheure passive Masse in Bewegung gesetzt werden kann. Er hält das letztere nur für möglich, wenn die chemische Energie erst in Wärme umgesetzt wird, die sich überallhin verbreiten kann und daher in ihrer Wirkung nicht auf ihren Entstehungsort beschränkt ist. Die Umformung eines Teils der Wärme in mechanische Energie kommt nach der Vorstellung ENGELMANNs durch Verkürzung quellungsfähiger Elemente infolge der Erwärmung zustande[760]. Bei der letzteren Annahme stützt er sich einerseits auf die Tatsache, daß alle positiv-einachsig-doppeltbrechenden Substanzen, wenn sie quellbar sind, bei der Quellung sich in der Richtung der optischen Achse verkürzen, und anderseits auf den Umstand, daß quellbare Körper stärker quellen, wenn sie erwärmt werden. Im Muskel haben wir aber nach ENGELMANNs Untersuchungen in der anisotropen Substanz positiv-einachsig-doppeltbrechende Elemente, und wie ENGELMANN ebenfalls gezeigt hat, geht bei der Kontraktion des Muskels aus der isotropen, dünnflüssigeren Masse des Muskelsegments flüssige Substanz in die festere Masse der anisotropen Schicht über, so daß diese an Volumen zunimmt. ENGELMANN stellt sich daher vor, daß die Elemente der anisotropen Muskelsubstanz, die er als „Inotagmen“ bezeichnet, bei der Muskelerregung infolge der aus chemischer Energie stammenden Wärme quellen und sich verkürzen, so daß eine Zuckung des Muskels erfolgt. Besonders anschaulich macht ENGELMANN seine Vorstellung durch einen Versuch, bei dem die Kontraktion des Muskels nach dem thermo-dynamischen Prinzip durch Wärmequellung und Verkürzung einer Darmsaite nachgeahmt wird. In einem mit Wasser gefüllten Becherglase befindet sich in Verbindung mit einem Schreibhebel eine aufgespannte Violinsaite, die umgeben ist von einer Drahtspirale. Durch Schließung eines Stromes kann die Drahtspirale erwärmt werden, so daß sich die Wärme der Darmsaite mitteilt. Die Folge davon ist, daß sich die Darmsaite durch Quellung verkürzt und durch Hebung eines Gewichts eine gewisse Arbeit leistet. Bei Oeffnung des Stromes und Abkühlung der umgebenden Drahtspirale erfolgt dann wieder eine Streckung der Saite. Durch seine geniale Einfachheit macht dieser Versuch die ENGELMANNsche Auffassung außerordentlich anschaulich, und es ist nicht zu leugnen, daß er dadurch auf den ersten Blick sehr für die thermo-dynamische Theorie einnimmt. Dennoch lassen sich mehrfache Bedenken gegen diese Theorie geltend machen, und in der Tat sind auch besonders von Fick[761] gegen ENGELMANNs Auffassung bereits verschiedene, schwerwiegende Einwände erhoben worden.
Es ist nicht notwendig, hier alle Schwierigkeiten zu erörtern, die sich der Annahme der ENGELMANNschen Theorie entgegenstellen. Nur eine Schwierigkeit mag kurz hervorgehoben werden, weil uns ihre Betrachtung hinüberleitet zu einer anderen Auffassung, die sich auf Grund der mikroskopischen Tatsachen den chemischen Theorien der Muskelkontraktion anschließt. Wir müssen nämlich von einer Theorie der Muskelkontraktion fordern, daß ihr Prinzip nicht bloß für die Erklärung der Muskelbewegung, sondern auch für die Erklärung aller anderen Formen der Kontraktionsbewegungen, d. h. also auch für die Protoplasmabewegung und Flimmerbewegung, Gültigkeit besitzt. „Da dieselben durch alle Uebergänge unter sich und mit der Muskelbewegung verbunden sind, muß dasselbe Erklärungsprinzip bei allen Anwendung finden können.“ Dieser ersten und obersten Forderung, die ENGELMANN selbst aufstellt, entspricht aber die obige Theorie nicht ganz. Sie ist z. B. nicht imstande, die Bewegungen amöboider Protoplasmamassen zu erklären. Gerade diese einfachste aller Kontraktionsbewegungen macht der ENGELMANNschen Auffassung unüberwindliche Schwierigkeiten. Um die Tatsachen der amöboiden Bewegung mit seiner Theorie in Einklang zu bringen, ist ENGELMANN[762] zu der Annahme gezwungen, daß auch im amöboiden Protoplasma kontraktile Elemente vorhanden sein müssen, die eine langgestreckte Form haben und in der Weise quellbar sind, daß sie bei der Quellung kugelig werden. Allein diese Annahme läßt sich einerseits wohl kaum begründen, anderseits ist sie auch nicht imstande, die Tatsachen wirklich zu erklären. Trotz genauer Untersuchung ist es nämlich nicht gelungen, im amöboiden Protoplasma ähnliche doppeltbrechende Elemente zu finden, wie in den faserig differenzierten Formen der kontraktilen Substanz. Die Beobachtung, daß beim Actinosphaerium die Pseudopodien einen doppeltbrechenden Achsenstrang haben, ist nicht verwendbar, weil der Achsenstrahl der Actinosphaerium-Pseudopodien überhaupt nichts mit der Kontraktion zu tun hat, sondern nur eine Gleitbahn vorstellt, auf der das kontraktile Protoplasma strömen kann, analog den Radiolarienskelettstrahlen, wie sie besonders bei der Gruppe der Acanthometriden sehr verbreitet sind. Aber selbst wenn das kontraktile Protoplasma der Rhizopoden etc. aus lauter langgestreckten und bei der Quellung kugelig werdenden Elementen bestände, wäre auf Grund dieser Annahme das Ausstrecken so außerordentlich langer und dünner fadenförmiger Pseudopodien, wie sie die meisten Foraminiferen und Radiolarien und zahllose Rhizopodenformen des Süßwassers charakterisieren, vollkommen unbegreiflich. Und dennoch ist die Bildung dieser Pseudopodienformen nichts anderes als die Ausstreckung der kürzeren, stumpfen oder zerfetzten Ausläufer einer Amöbe oder eines Leukocyten. Aber selbst die Bildung dieser Pseudopodien kann man sich nach der ENGELMANNschen Auffassung nicht erklären. Wie sollte man sich das Zustandekommen einer auch nur einigermaßen bemerkenswerten Formveränderung des Amöbenkörpers durch bloße Streckung zahlloser, in ihrer Größe weit unter der Grenze der Wahrnehmbarkeit befindlicher Elemente vorstellen, die, wie ENGELMANN selbst annimmt, regellos nach allen Richtungen durcheinanderliegen? Diese Schwierigkeiten sind unüberwindlich.
Hier sind wir aber gerade bei dem Punkte angelangt, an dem das Problem der Kontraktionsbewegungen am ersten mit Aussicht auf Erfolg in Angriff genommen werden kann. In der amöboiden Zelle haben wir die primitivste Form der kontraktilen Substanz; hier liegen die Verhältnisse unleugbar viel einfacher als bei den faserig entwickelten Formen mit ihren komplizierten Substanzdifferenzierungen. Dazu kommt noch, daß wir an den freilebenden und verhältnismäßig großen Protoplasmamassen der amöboiden Zellen unvergleichlich viel leichter die Bewegungen des lebendigen Objekts experimentell untersuchen können, als an den sehr kleinen Bestandteilen des Muskels, die, aus der Kontinuität mit den Nachbarn getrennt, unfehlbar in kürzester Zeit zugrunde gehen.
Gehen wir daher aus von der amöboiden Bewegung der nackten Protoplasmamassen[763]. Was allen Kontraktionsbewegungen gemeinsam ist, das ist, wie wir früher[764] gesehen haben, der Wechsel von zwei entgegengesetzten Phasen, einer Kontraktionsphase, bei der die Oberfläche im Verhältnis zur Masse verkleinert wird, und einer Expansionsphase, bei der die Oberfläche wieder vergrößert wird. Bei der amöboiden Bewegung äußert sich die Expansionsphase in der Ausstreckung und die Kontraktionsphase in der Einziehung der Pseudopodien und dem Streben nach Kugelgestalt (Fig. 301). Der Wechsel zwischen beiden bildet den Gesamtvorgang der amöboiden Bewegung. Stellen wir uns daher zunächst einen nackten Protoplasmatropfen vor, etwa eine Amöbenzelle, so verhält sich, wie wir wissen, diese Protoplasmamasse physikalisch wie eine Flüssigkeit. Ihre Bewegungen müssen also, wie vor allem BERTHOLD[765] in konsequenter Weise für zahlreiche spezielle Fälle durchgeführt hat, den allgemeinen Gesetzen tropfbarer Flüssigkeiten gehorchen. Physikalisch betrachtet ist aber jede Bewegung eines Flüssigkeitstropfens der Ausdruck von Veränderungen seiner Oberflächenspannung, d. h. der Kohäsionsenergie, mit der sich bei einem freischwebend gedachten Tropfen die einzelnen Teilchen untereinander anziehen. Ist die Oberflächenspannung an allen Punkten der Oberfläche gleich groß, so nimmt der Tropfen Kugelform an. Wird sie an einer Stelle durch irgendwelche Vorgänge vermindert, so erfolgt hier infolge des Druckes von den anderen Seiten her eine Vorwölbung des Tropfens, die so lange wächst, bis ein neuer Gleichgewichtszustand hergestellt ist. Wird die Oberflächenspannung an der vorgewölbten Stelle wieder größer, so geht die Protuberanz in entsprechendem Maße wieder zurück. Demnach ist die Kugelgestalt einer Amöbenzelle der Ausdruck für eine an der ganzen Oberfläche gleich große Oberflächenspannung, die Ausstreckung von Pseudopodien an einzelnen Stellen der Oberfläche das Kriterium für eine Verminderung der Oberflächenspannung an diesen Punkten. Das Problem der amöboiden Bewegung, in dieser Weise präzisiert, gipfelt also in der Frage, aus welchen Bedingungen heraus einerseits eine Verminderung der Oberflächenspannung (Ausstreckung der Pseudopodien) und anderseits wieder eine Erhöhung der Oberflächenspannung (Einziehung der Pseudopodien und Streben nach Kugelform) zu stande kommt.
Fig. 301.
Amöbe im Umriß
. Im Innern liegt der Kern.
A
Pseudopodien nach verschiedenen Richtungen ausstreckend,
B
in einer Richtung kriechend,
C
kugelig kontrahiert.
Ueber die Bedingungen für die Verminderung der Oberflächenspannung geben uns die bereits früher besprochenen Versuche KÜHNEs[766] an Amöben und Myxomyceten Aufschluß. Wenn KÜHNE einen Tropfen mit Amöben in ein sauerstofffreies Medium brachte, das im übrigen indifferent war, wie etwa Wasserstoff, so blieb die amöboide Bewegung allmählich stehen, und die Amöben verharrten in den Gestalten, die sie gerade beim Kriechen angenommen hatten. Ließ er aber nunmehr wieder Sauerstoff hinzutreten, so begann die Bewegung von neuem, es wurden neue Pseudopodien ausgestreckt, und die Amöben krochen weiter. Nicht minder deutlich sind die Versuche KÜHNEs an Myxomycetenplasmodien. Kühne brachte ein Klümpchen eines eingetrockneten Didymiumplasmodiums in ein Kölbchen, das mit sauerstofffreiem Wasser gefüllt war. In diesem Zustande blieb jede Pseudopodienentwicklung tagelang aus. Ließ er indessen einige kleine Luftblasen in das Kölbchen hineintreten, so begann die Pseudopodienausbreitung sofort, und nach fünf Stunden hatte sich das Protoplasmaklümpchen an der Innenwand des Kölbchens zu einem reichverzweigten Netzwerk ausgestreckt. Hiernach liegt es auf der Hand, daß es die chemische Einfügung des Sauerstoffs in die lebendige Substanz sein muß, welche die Oberflächenspannung an bestimmten Stellen herabsetzt und so zur Pseudopodienbildung führt. Bei einseitiger Einwirkung des Sauerstoffs muß dieses Prinzip zur positiven Chemotaxis führen, wie sie auch tatsächlich durch STAHL[767] bei nackten Protoplasmamassen nachgewiesen worden ist. Bezüglich der Art und Weise, wie die Aufnahme des Sauerstoffs aus dem Medium die Oberflächenspannung des Protoplasmatropfens vermindert, werden wir uns jedenfalls zu denken haben, daß durch die chemische Einfügung des Sauerstoffs in die lebendige Substanz mit der Veränderung der chemischen Zusammensetzung die Kohäsion des Protoplasmas gelockert wird.
Daß durch chemische Beziehungen gewisser Bestandteile eines Flüssigkeitstropfens zu Stoffen des umgebenden Mediums amöboide Formveränderungen und Bewegungen des Tropfens hervorgerufen werden, dafür haben wir übrigens ein sehr anschauliches Analogon in der unbelebten Natur. Dasselbe liefern uns die interessanten Versuche von GAD[768] über das Verhalten von Oeltropfen in alkalischen Medien, die später auch von QUINCKE[769] studiert worden sind. Bekanntlich enthalten ranzige Fette und Oele zwischen den reinen Fett- und Oelmolekülen auch Moleküle von freien Fett- resp. Oelsäuren. Bei Berührung von freien Fett- resp. Oelsäuren mit Alkalien verbinden sich aber beide zu löslichen Seifen. Bringt man daher einen ranzigen Oeltropfen in eine schwach alkalische Flüssigkeit, so tritt an der Berührungsfläche beider eine fortwährende Seifenbildung ein. Dadurch wird die Oberflächenspannung lokal hier und dort vermindert, und es erfolgt eine richtige Pseudopodienbildung des Oeltropfens. Durch Abstufung der Alkaleszenz des Mediums und des Gehalts des Oeltropfens an freien Säuren kann man die verschiedensten Ausbreitungsformen erzeugen, von denen manche eine verblüffende Aehnlichkeit mit den Pseudopodienformen bestimmter Rhizopoden besitzen (Fig. 302).
Auch die positive Chemotaxis nackter Protoplasmamassen konnte bei Berücksichtigung der hier entwickelten Bedingungen der Oberflächenspannungsveränderungen experimentell an leblosen Objekten nachgeahmt werden. So hat neuerdings RHUMBLER[770] positive Chemotaxis von Ricinuströpfchen nach Chloroform oder Nelkenöl oder 5-proz. Kalilauge hergestellt, indem er sie in ein Medium von 80-proz. Alkohol brachte. Hier krochen die Ricinusöltröpfchen genau wie die Leukocyten im Wirbeltierkörper in Kapillarröhrchen hinein, die mit den chemotaktisch wirkenden Stoffen angefüllt waren. Ebenso hat später BERNSTEIN[771] an Quecksilbertropfen künstlich eine chemotaktische Bewegung erzeugt, indem er sie in verdünnte Schwefelsäure setzte und in einige Entfernung einen Kristall von Kaliumbichromat brachte, das sich allmählich auflöst, an den Quecksilbertropfen herandiffundiert und als einseitiger Reiz lokal die Oberflächenspannung des Tropfens unter Bildung eines Niederschlages von Quecksilberchromat herabsetzt, so daß eine positiv chemotaktische Bewegung des Tropfens nach dem Kaliumbichromat erfolgt.
Fig. 302.
Verschiedene Ausbreitungsformen von Oeltropfen in alkalischer Flüssigkeit
.
Kann demnach durch chemische Beziehungen gewisser Teilchen eines Tropfens zu Stoffen des umgebenden Mediums die Oberflächenspannung vermindert werden, so muß umgekehrt eine Oberflächenspannungsvermehrung zustande kommen durch gesteigerte Anziehung zwischen den Teilchen des Tropfens. Eine solche Steigerung der Kohäsion zwischen den Bestandteilen des Protoplasmas wird verständlich, wenn wir daran denken, daß ja die Stärke der Molekularattraktion durch Veränderungen der chemischen Konstitution der Moleküle beeinflußt wird. Oben hatten wir gesehen, daß die Kohäsion durch die chemische Einfügung des Sauerstoffs in die lebendige Substanz vermindert wird. Tritt nunmehr der Zerfall der Biogenmoleküle ein, so liegt wohl die Vorstellung nahe, daß diese tiefgehende chemische Veränderung wieder mit einer Zunahme der Kohäsion verbunden ist.