Fünftes Kapitel. Von den Reizen und ihren Wirkungen. (continued 2)
Reading edition
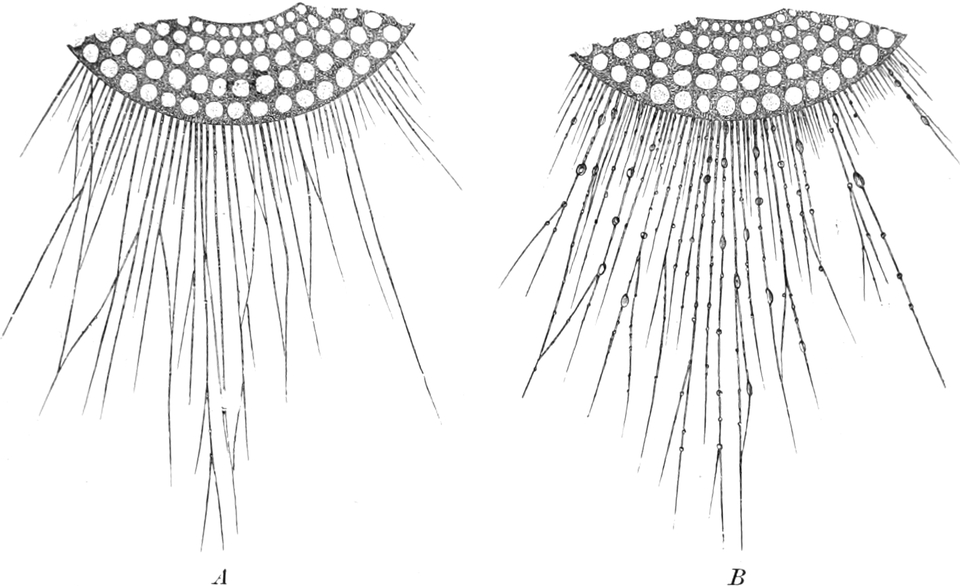
Fig. 196.
Orbitolites
. Ein Teil der Schalenoberfläche mit ausgestreckten, fadenförmigen Pseudopodien.
A
Ungereizt,
B
nach stärkeren Erschütterungsstößen.
Dem äußeren Eindruck nach könnte man verführt werden, den Tetanus der kontraktilen Substanzen für einen Lähmungsvorgang zu halten, denn die Amöbe, das Actinosphaerium, der Muskel etc. befinden sich während des tetanischen Zustandes anscheinend in völliger Ruhe und Bewegungslosigkeit, wie die gleichen Objekte, wenn etwa ein Narcoticum auf sie eingewirkt hat. Allein, beide Zustände haben durchaus nichts miteinander zu tun. Der Unterschied ist vielmehr fundamental; das zeigt eine genauere Untersuchung des Verhaltens der Stoffwechselvorgänge. Während nämlich in der Narkose die Stoffwechselvorgänge eine wirkliche Lähmung erfahren, haben die Stoffwechseluntersuchungen am tetanisierten Muskel ergeben, daß im Tetanus der Stoffwechsel bedeutend gesteigert ist. Die Menge der Zerfallsprodukte der lebendigen Substanz, wie Kohlensäure, Milchsäure etc., erfährt eine außerordentliche Zunahme; gewisse Stoffe, die im Muskel aufgehäuft sind, wie Glykogen, werden im Tetanus verbraucht, und die Wärmeproduktion des Muskels steigt während der tetanischen Kontraktion in beträchtlichem Maße. Daraus geht hervor, daß im tetanischen Zustande der Lebensvorgang eine bedeutende Steigerung erfährt, daß also der Tetanus durchaus kein Lähmungs-, sondern im Gegenteil ein wirklicher Erregungsvorgang ist.
Analog dem Tetanus der kontraktilen Substanzen erscheint auch die Lichtproduktion der Noktiluken bei intermittierender Reizung als ein kontinuierlicher Vorgang. Freilich nimmt dieselbe nach kurzer Zeit schon ganz bedeutend an Intensität ab: sie ermüdet[397].
b) Lähmungswirkungen.
So mannigfaltig und weit verbreitet die erregenden Wirkungen mechanischer Reize sind, so spärlich sind bisher lähmende Wirkungen bekannt geworden, die durch mechanische Reize hervorgerufen werden, und sogar diese spärlichen Fälle sind zum Teil noch wenig untersucht.
So hat HORVATH[398] und später übereinstimmend mit ihm REINKE[399] die Angabe gemacht, daß Bakterien, wenn sie dauernd regelmäßigen Erschütterungen in ihren Kulturen ausgesetzt werden, eine Beeinträchtigung ihrer Vermehrung erfahren, mit anderen Worten, daß eine Lähmung des Wachstums stattfindet. Später ist von anderen Seiten die Beweiskraft der betreffenden Experimente wieder angefochten worden; aber darauf hat MELTZER[400] in einer ausführlichen Versuchsreihe die Beobachtungen von HORVATH und REINKE im wesentlichen bestätigt, indem er zeigte, daß regelmäßige Vibrationen nicht bloß eine Lähmung des Wachstums, sondern unter bestimmten Verhältnissen sogar den vollständigen Tod und körnigen Zerfall des Protoplasmas herbeiführen können.
Ferner machte ENGELMANN[401] die Beobachtung, daß die Bewegung der Diatomeen und Oscillarien nach Erschütterungen stillsteht. Allein, hier bleibt die Frage unentschieden, ob dieser Stillstand der Bewegung als Lähmungsvorgang oder vielmehr als Ausdruck tetanischer Erregung, wie etwa der Stillstand der Protoplasmabewegung bei den tetanisierten Amöben, zu deuten sei.
Endlich haben wir aber in der Drucklähmung der Nerven jedenfalls einen wirklichen Lähmungsvorgang vor uns, der den Lähmungsvorgängen, welche die Narcotica hervorrufen, an die Seite zu stellen ist. Diese Drucklähmung, die eintritt, wenn ein Nerv einige Zeit, aber nicht zu stark, komprimiert wird, ist als „Gefühl des Einschlafens“ der Extremitäten allgemein bekannt. Außer in den subjektiven Empfindungen äußert sich das „Eingeschlafensein“ darin, daß die Reizleitungsfähigkeit des gedrückten Nerven unterbrochen ist, so daß die Muskeln, die von dem betreffenden Nerven versorgt werden, eine Zeitlang nicht durch den Nerven zur Kontraktion erregt werden können. Kurze Zeit nach Aufhebung des Druckes stellt sich dann die Leitungsfähigkeit wieder ein.
Damit dürften ziemlich alle Tatsachen erschöpft sein, die als Lähmungswirkungen mechanischer Reize aufgefaßt werden können.
4. Die Wirkungen thermischer Reizung.
Die Anwendung der thermischen Reizung läßt bei weitem weniger Modifikationen zu als die Anwendung mechanischer oder gar chemischer Reize, denn wir können lediglich als Reiz eine Temperaturerhöhung oder Temperaturerniedrigung auf die lebendige Substanz einwirken lassen. Rhythmische Temperaturschwankungen von einiger Geschwindigkeit lassen sich der Natur des thermischen Reizes entsprechend nicht leicht erzielen, da die Wärme zu lange Zeit braucht, um sich einem Körper mitzuteilen oder aus ihm zu verschwinden. Daher ist es z. B. nicht möglich, einen dem mechanischen Tetanus entsprechenden Wärmetetanus zu erzeugen. So gestaltet sich denn die thermische Reizung überaus einfach, und ebenso einfach erweisen sich die Wirkungen derselben.
Wenn wir ausgehen von der Durchschnittstemperatur, unter der sich eine Zelle normalerweise befindet, die also das Optimum dieser Lebensbedingung vorstellt, so finden wir als allgemeine Wirkung aller Temperaturveränderungen die Tatsache, daß mit steigender Temperatur die Intensität der Lebensvorgänge bis zu einem bestimmten Punkte zu-, mit sinkender Temperatur bis zum völligen Stillstand abnimmt. Steigt die Temperatur über das Maximum der Erregung noch weiter, so tritt eine sehr schnell zunehmende Lähmung ein. Das findet in den verschiedenartigsten Lebensäußerungen seinen Ausdruck.
Diese Fundamentaltatsache aller Temperaturreizung ist, soweit die mittleren Temperaturschwankungen in Betracht kommen, in vollkommenem Einklang mit der von VAN ’T HOFF[402] für zahlreiche chemische Prozesse nachgewiesenen Gesetzmäßigkeit, die darin besteht, daß ihre Reaktionsgeschwindigkeit mit dem Steigen der Temperatur um je 10° C auf das 2–3-fache steigt. In der Tat ist für eine ganze Reihe von speziellen Lebensäußerungen festgestellt worden, daß sie innerhalb gewisser Grenzen genau der VAN ’T HOFFschen Regel folgen. So hat z. B. COHEN[403] durch Rechnung auf Grund der von O. HERTWIG gefundenen Werte gefunden, daß die Geschwindigkeit mit der sich Froscheier entwickeln, der VAN ’T HOFFschen Temperaturregel gehorcht. Das gleiche hat ABEGG[404] für die Entwicklung von Seeigeleiern auf Grund der Versuche von PETER festgestellt. Für die Kohlensäure-Assimilation in den grünen Pflanzenteilen hat Miss MATTHAEI[405] dieselbe Gesetzmäßigkeit ermittelt. Schließlich hat KANITZ[406] für die pulsierenden Vakuolen der Infusorien und für die Schlagfrequenz des Säugetierherzens auf Grund der vorliegenden Erfahrungen ebenfalls die Gültigkeit der VAN ’T HOFFschen Regel erwiesen.
Ist also die Gültigkeit der Temperaturregel für viele spezielle Lebensäußerungen zweifellos nachgewiesen, so muß doch auf der anderen Seite im Auge behalten werden, daß das nur immer für gewisse Breiten der Temperatur gilt. Darüber hinaus nach der positiven sowohl wie nach der negativen Seite folgen die Lebensäußerungen der VAN ’T HOFFschen Regel nicht mehr. Diese Tatsache wird aber ohne weiteres verständlich, wenn wir daran denken, daß das Leben ein aus ungemein zahlreichen chemischen Einzelprozessen bestehender Vorgang ist, dessen einzelne Glieder in engster Abhängigkeit voneinander stehen, vor allem auch in engster Abhängigkeit bezüglich der bei ihnen beteiligten Massen. Da die an den Einzelreaktionen des Stoffwechsels beteiligten Massen von chemischen Stoffen aber bei steigender oder sinkender Temperatur nicht in dem Maße zur Verfügung stehen, wie sie bei dem engen Ineinandergreifen der Prozesse gerade erforderlich sind, sondern entweder mangeln oder im Ueberfluß vorhanden sind, so muß darunter der Ablauf des gesamten Stoffwechselgetriebes leiden. Das macht sich daher nicht bloß bemerkbar, wenn bestimmte Temperaturgrade durch weiteres Steigen oder Sinken der Temperatur überschritten werden, sondern, wie aus den Versuchen von Miss MATTHAEI hervorgeht, auch, wenn Temperaturen unterhalb dieser Grade längere Zeit einwirken.
Es mögen nun eine Reihe von speziellen Erfahrungen über die erregende und lähmende Wirkung von Temperaturreizen auf verschiedene Formen der lebendigen Substanz folgen.
a) Erregungswirkungen.
Für die Erregung des Stoffwechsels durch steigende Temperatur bietet das Pflanzenleben eine große Anzahl von deutlichen Beispielen, die zeigen, wie mit steigender Temperatur innerhalb bestimmter Grenzen die Lebensäußerungen, wie Kohlensäurespaltung, Stärkebildung, Eiweißbildung etc., an Intensität zunehmen. Dabei findet man, daß die Temperaturen, mit denen die Erregung ihr Maximum erreicht, nicht nur für die verschiedenen Formen der lebendigen Substanz, sondern auch für die einzelnen Teilprozesse des Stoffwechsels an demselben Objekt sehr verschieden sind. Ebenso beobachtet man auch im Tierreich, daß mit den obigen Einschränkungen der Stoffwechsel proportional der Temperatur zunimmt, und bereits SPALLANZANI hat für die Kaltblüter, speziell für die Schnecken, gezeigt, daß der Sauerstoffverbrauch mit steigender Temperatur wächst.
Es darf indessen nicht übersehen werden, daß es einen Fall gibt, in dem der Stoffwechsel umgekehrt mit abnehmender Außentemperatur zu- und mit zunehmender abnimmt. Das ist das Verhalten der homoiothermen (warmblütigen) Tiere. Es ist eine bekannte Tatsache, daß die Warmblüter mit steigender Temperatur eine Abnahme des Stoffwechsels erfahren. Der Mensch hat im Winter einen viel regeren Stoffwechsel als im Sommer; er verbraucht am meisten Nahrung bei den niedrigsten und am wenigsten bei den höchsten Temperaturgraden. Dieses merkwürdige Paradoxon ist bisher noch wenig aufgeklärt, und PFLÜGER[407], der sich eingehend mit dieser Frage beschäftigt hat, kommt auch nur auf Grund gewisser Hypothesen zu einer Lösung dieses scheinbaren Widerspruchs. Das Charakteristikum des Warmblüters liegt bekanntlich gegenüber allen anderen Tieren darin, daß er in seinem Nervensystem Mechanismen besitzt, die auf reflektorischem Wege die Temperatur des Körpers regulieren und auf gleicher Höhe erhalten, mag die Außentemperatur noch so großen Schwankungen unterworfen sein. Der Stoffwechsel, der ja die Quelle der Wärmeproduktion im tierischen Organismus ist, steht aber bei den Warmblütern im Dienste der Wärmeregulation. Ist die Außentemperatur sehr niedrig, so wird auf dem Wege durch das Nervensystem reflektorisch von der Haut her der Stoffwechsel und damit die Wärmeproduktion gesteigert, so daß die stärkeren Wärmeverluste des Körpers wieder gedeckt werden, und umgekehrt, ist die Außentemperatur sehr hoch, so erfährt der Stoffwechsel und damit die Wärmeproduktion, ebenfalls auf reflektorischem Wege, eine entsprechende Herabsetzung. Die Stoffwechselsteigerung der Zellen bei der Kälte und die Stoffwechselherabsetzung bei der Wärme wird also nicht direkt durch die Temperatur hervorgerufen, sondern durch Reize, die vom Zentralnervensystem herkommen. Aber damit ist das Paradoxon doch noch nicht beseitigt, sondern nur verschoben. Die Erregung des Zentralnervensystems, welche die Reize liefert, wird ja erst von der Körperoberfläche, von der Haut her durch Abkühlung oder Erwärmung auf dem Wege der Temperaturnerven ausgelöst, und so bleibt uns immer noch die Frage offen, wie steigende Temperatur eine Herabsetzung und sinkende Temperatur eine Steigerung der Erregung im Zentralnervensystem hervorrufen kann. Um diese Frage in Uebereinstimmung mit dem allgemeinen Temperaturgesetz zu lösen und so das anscheinende Paradoxon zu beseitigen, hat sich PFLÜGER[408] folgende Hypothese gebildet. Er stellt sich vor, „daß das Zentralorgan des Temperatursinnes zwei Substanzen enthalte als Substrate zweier verschiedener spezifischer Energien; die Erregung der einen dieser Substanzen offenbart sich dem Bewußtsein als Wärmegefühl, die Erregung der anderen als Kältegefühl. Man hätte sich dann noch weiter vorzustellen, daß beide Substanzen in solchen Leitungsbeziehungen stehen, denen zufolge die Erregung der einen Substanz abnimmt, wenn die der anderen steigt, und umgekehrt“. Solche Verhältnisse kennen wir in der Tat mehrfach in unserem Zentralnervensystem. Unter dieser Voraussetzung ist es klar, daß mit steigender Außentemperatur das Wärmezentrum erregt und umgekehrt das Kältezentrum gehemmt werden muß, während mit sinkender Temperatur das Wärmezentrum gehemmt und umgekehrt das Kältezentrum erregt wird. Steht daher das Kältezentrum mit den den Stoffwechsel beeinflussenden Nervenbahnen in Verbindung, so muß Hemmung des Kältezentrums durch erhöhte Außentemperatur eine Herabsetzung des Stoffwechsels zur Folge haben, und umgekehrt. Indessen ist diese Vorstellung doch rein hypothetisch.
Die Steigerung der Lebensäußerungen durch zunehmende Temperatur macht sich auch an den Formbildungsvorgängen bemerkbar, wo sich diese überhaupt deutlich ausprägen, also vor allem an Organismen, die in der Entwicklung begriffen sind, an Zellen, deren lebendige Substanz sich vermehrt und fortpflanzt. So fangen Pflanzensamen erst bei einer bestimmten Temperatur an zu keimen: der Mais etwa bei 9° C, Dattelkerne erst bei etwa 15° C[409]. Von diesen Punkten an nimmt mit steigender Temperatur das Wachstum immer mehr zu bis etwa gegen 30–40° C. Ebenso sind zahlreiche Beobachtungen an Bakterien gemacht worden, die dasselbe Verhältnis gezeigt haben. Der Heubacillus z. B. wächst nach den Untersuchungen von BREFELD erst von einer Temperatur von 6° C an und vermehrt sich mit steigender Temperatur immer schneller bis zu 30° C. Der Tuberkelbacillus beginnt, wie KOCH gezeigt hat, erst bei 28° C zu wachsen und pflanzt sich am schnellsten fort bei 37–38° C. Daß der Tuberkelbacillus erst bei so hoher Temperatur anfängt zu wachsen, ist auf seine parasitische Lebensweise in den Geweben der warmblütigen Tiere zurückzuführen, mit deren Körpertemperatur auch das Optimum seines Wachstums zusammenfällt. Eine Anzahl ähnlicher Beispiele aus dem Leben der Bakterien hat DE BARY[410] in seinen Vorlesungen über Bakterien zusammengestellt. Untersuchungen an anderen Objekten, wie z. B. an tierischen Eizellen, Leukocyten etc., würden voraussichtlich ganz analoge Resultate ergeben.
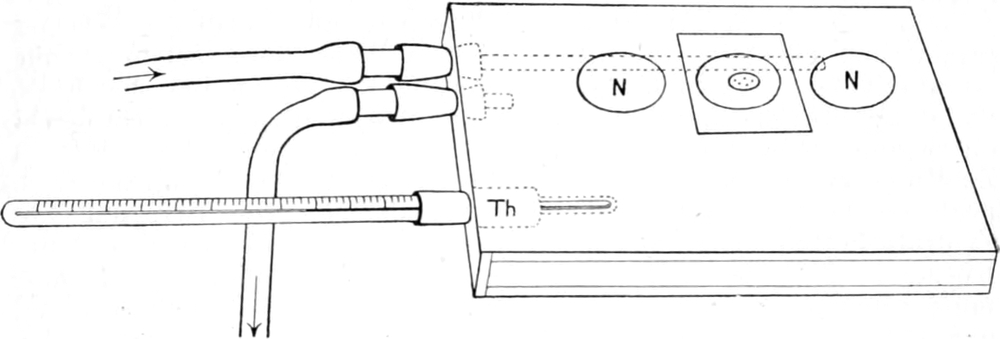
Fig. 197.
Heizbarer Objekttisch
nach P
FEIFFER
.
Am unmittelbarsten aber machen sich wieder die erregenden Wirkungen steigender Temperatur am Energieumsatz bemerkbar, insbesondere an der Bewegung. Auch hier zeigt sich fast allgemein eine Zunahme der Bewegung mit steigender Temperatur. Um diese Tatsache an einzeln lebenden Zellen zu verfolgen, können wir uns am besten des von PFEIFFER zu diesem Zwecke konstruierten heizbaren Objekttisches bedienen, der aus einer flachen viereckigen Glaskammer besteht, die an ihrer Oberseite näpfchenförmige Vertiefungen (Fig. 197 N) trägt. In diese Vertiefungen kann entweder der Tropfen mit den zu untersuchenden einzelligen Organismen direkt hineingebracht werden oder, was in vielen Fällen zweckmäßiger ist, es kann auf diese Vertiefungen ein Deckglas mit dem an seiner Unterseite hängenden Tropfen aufgelegt werden, so daß man selbst mit den stärksten Vergrößerungen an die Objekte herangehen kann. Geheizt resp. abgekühlt wird der Objektträger dann durch Wasser von bestimmter Temperatur, das man aus einer erhöht stehenden Ausflußflasche in der auf Fig. 198 angegebenen Weise durch die Glaskammer hindurchfließen läßt. Die Temperatur im Innern der Kammer wird mittelst eines Thermometers (Fig. 197 Th) gemessen. Für die Feststellung der exakten Temperatur im Tropfen sind daher empirisch festzustellende Korrekturen vorzunehmen.
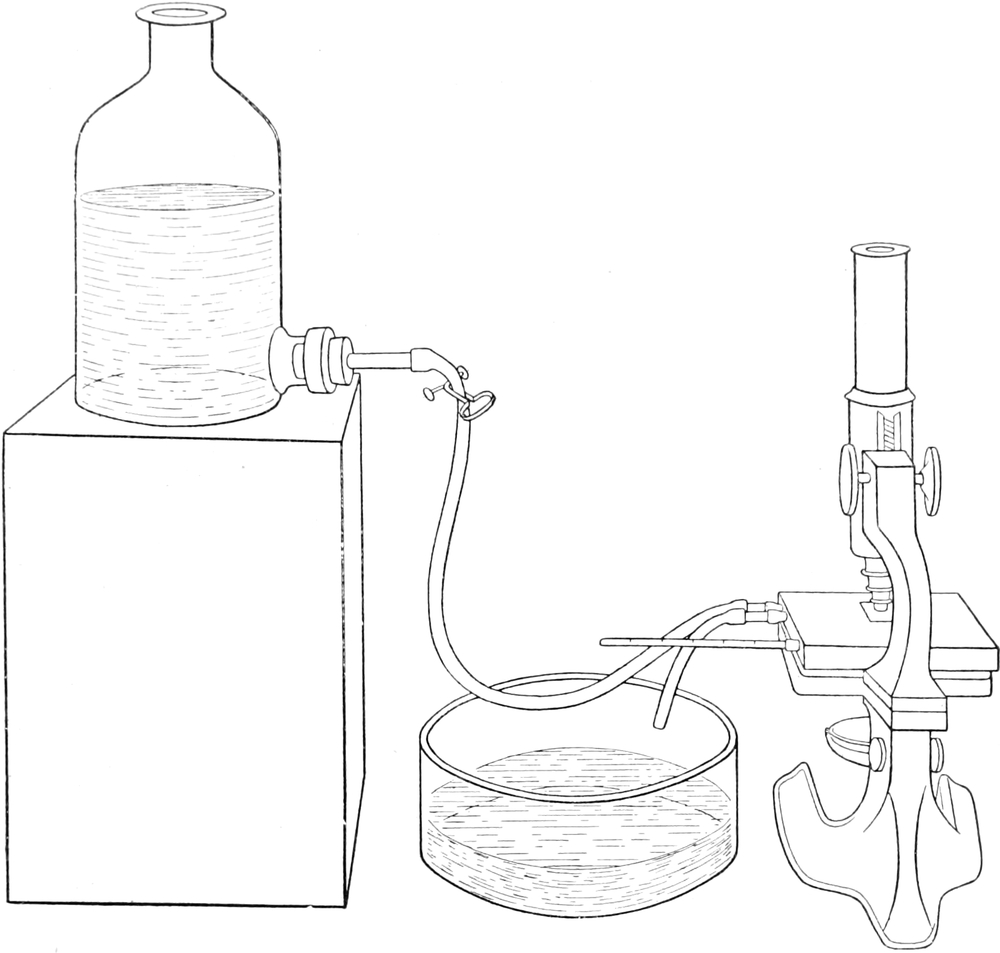
Fig. 198.
Vorrichtung zur mikroskopischen Untersuchung von einzelligen Organismen auf dem heizbaren Objekttische
.
Auf diese Weise können wir uns von der Tatsache überzeugen, daß die Protoplasmabewegung der Amöben, wie bereits ENGELMANN[411] fand, mit steigender Temperatur immer lebhafter wird, und daß diese Protisten, wie KÜHNE[412] zuerst feststellte, bei 35° C in heftige Kontraktion verfallen, indem sie Kugelform annehmen, wie nach heftiger chemischer oder mechanischer Reizung (vergl. Fig. 194 B p. 453). Ganz analog verhalten sich die anderen Rhizopoden, wie Actinosphaerium, Orbitolites etc. (vergl. Fig. 195 und 196 p. 454 und 455), sowie die Leukocyten der verschiedenartigen Tiere, und auch die Protoplasmaströmung der Pflanzenzellen zeigt dieselben Verhältnisse. MAX SCHULTZE[413] und NÄGELI[414] maßen die Geschwindigkeit der Körnchenströmung in den Protoplasmafäden der Zellen von Tradescantia und Nitella bei zunehmender Temperatur und sahen, wie sie mit steigender Temperatur immer größer wird, und KÜHNE (l. c.) stellte fest, daß das Protoplasma in den Zellen der Staubfädenhaare von Tradescantia bei einer Temperatur von 45° C heftige Kontraktionsbewegungen zeigt, indem es sich in der typischen Weise zu Kugeln zusammenballt (vergl. Fig. 47 p. 131).
Bei der erregenden Wirkung steigender Temperatur auf die Protoplasmabewegung ist eine wichtige Tatsache zu berücksichtigen, die für die Erklärung mancher, noch später zu behandelnder Beobachtungen von großer Bedeutung ist: das ist die Tatsache, daß die beiden Phasen der Bewegung, die Expansionsphase und die Kontraktionsphase, durchaus nicht gleichmäßig erregt werden[415]. Man kann diese Tatsache am besten an marinen Rhizopoden mit langen, fadenförmigen Pseudopodien feststellen, bei denen die Protoplasmateilchen einen sehr langen Weg zurückzulegen haben. Beobachtet man z. B. die Wirkung steigender Temperatur auf Rhizoplasma (Fig. 147 p. 337), so sieht man, daß bis zu etwa 31–32° C hinauf zwar beide Phasen mehr und mehr erregt werden, so daß die Protoplasmabewegung beschleunigt wird, daß aber dabei stets die Expansionsphase die Kontraktionsphase überwiegt, so daß sich die Pseudopodien mehr und mehr und immer reichlicher ausstrecken. Bei etwa 31–32° C ist die Erregung beider Phasen gleich stark. Steigert man die Temperatur noch mehr, so sieht man, daß jetzt die Kontraktionsphase mehr und mehr die Expansion überwiegt, und daß bei sehr langsamer Zunahme der Temperatur bis gegen 39 und 40° C hin die Pseudopodien schließlich ganz eingezogen werden. Die Erregungskurven für die Expansionsphase und Kontraktionsphase fallen also nicht zusammen, gehen auch nicht parallel, sondern haben beide an verschiedenen Stellen ihr Maximum. Zweifellos ist ein ähnliches Verhalten auch bei anderen kontraktilen Objekten und im Gebiete anderer Reize zu beobachten, und es wäre eine sehr dankbare Aufgabe, in dieser Richtung weitere Studien zu machen.
Die Flimmerbewegung wird, wie ENGELMANN[416] an Flimmerepithelien und ROSSBACH[417] an Infusorien beobachtet haben, mit steigender Temperatur ebenfalls mehr und mehr bis zu einem bestimmten Grade erregt. Ein bequemes Objekt für die Beobachtung der Flimmerbewegung eines Epithels liefert uns die Rachenschleimhaut des Frosches. Es gelingt leicht, ein etwa 1–2 Quadratzentimeter großes Stück dieser Flimmerhaut, deren Wimperschlag nach der Speiseröhre hin gerichtet ist, vom Gaumen loszulösen und abzuschneiden. Spannen wir dieses Stück dann mit vier Nadeln auf einem Korkrahmen (Fig. 199) aus und bedecken wir die ausgespannte Flimmerschleimhaut mit einem Deckgläschen, so können wir an diesem Objekt, wenn es vor Vertrocknung geschützt wird, tagelang die Flimmerbewegung beobachten und ihre Geschwindigkeit, sei es direkt unter dem Mikroskop, sei es an dem Fortgleiten aufgelegter Blutgerinnsel oder Kohlenstaubpartikelchen, untersuchen. So ist es leicht, festzustellen, wie die Geschwindigkeit und Energie der Bewegung mit steigender Temperatur wächst. Ebenso leicht und vielleicht noch augenfälliger kann man an Infusorien auf dem heizbaren Objekttisch die Flimmerbewegung und ihre Erregung durch steigende Temperatur beobachten. ROSSBACH, der zuerst diese Untersuchungen an verschiedenen Wimperinfusorien gemacht hat, beschreibt, wie die Flimmerbewegung dieser Protisten an Geschwindigkeit immer mehr zunahm, so daß die Infusorien bei 25° C „pfeilschnell hin und her zu schießen“ begannen, bis ihre Bewegungen bei 30–35° C förmlich rasend wurden.
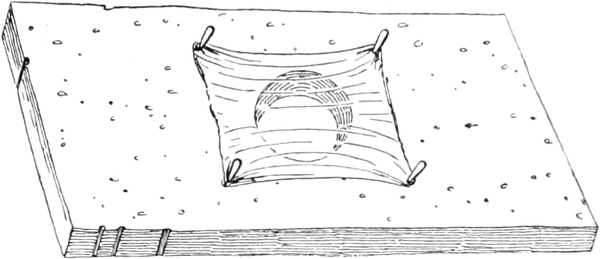
Fig. 199.
Rachenschleimhaut des Frosches auf einen Korkrahmen gespannt
.
Analog verhält sich schließlich auch der Muskel. Hängen wir z. B. einen Froschmuskel in eine Kochsalzlösung von 0,75 Proz., deren Temperatur schnell gesteigert wird, so verkürzt sich der Muskel von etwa 28° C an mit zunehmender Temperatur immer mehr, bis seine Kontraktion bei etwa 45° C ihren Höhepunkt erreicht. Tauchen wir aber den Muskel plötzlich in eine Kochsalzlösung von 45° C, so tritt sofort eine plötzliche Kontraktion ein. Auch die Erregbarkeit des Muskels wird mit steigender Temperatur erhöht.
So finden wir in der lebendigen Natur allgemein verbreitet die Tatsache, daß innerhalb gewisser Grenzen steigende Temperatur erregend auf die Lebensvorgänge wirkt.
b) Lähmungswirkungen.
Die entgegengesetzten Wirkungen wie die steigende hat die sinkende Temperatur. Wenn wir von der Durchschnittstemperatur, unter der sich ein Organismus normalerweise befindet, abwärtsgehend die Temperatur immer mehr und mehr herabsetzen, so finden wir fast durchgehends, daß auch die Lebensäußerungen an Energie mehr und mehr abnehmen, und daß sie von einem bestimmten niedrigen Temperaturgrade an, der für die verschiedenen Organismen und für die verschiedenen Lebensäußerungen sehr verschieden hoch liegt, gar nicht mehr wahrnehmbar sind. So sehen wir die meisten Pflanzen im Winter ihren Stoffwechsel einstellen, Seeigeleier, die in Teilung begriffen waren, bei einer Abkühlung auf 2–3° C in ihrer Entwicklung stillstehen, Amöben bei wenig über 0° C ihre Bewegung sistieren und, wenn die Abkühlung schnell erfolgt, in der Form, die sie gerade hatten, erstarren (Fig. 200 C). Das Protoplasma wird bei einem bestimmten niederen Temperaturgrad kältestarr. Indessen genügt eine Erwärmung über diesen Punkt, um die Kältestarre wieder zu lösen und die Lebensäußerungen wieder sichtbar auftreten zu lassen. Wird dagegen die Temperatur unter diesen Punkt noch mehr herabgesetzt, so gelangen wir schließlich an einen Temperaturgrad, bei dem die Lebensfähigkeit vernichtet wird, von dem an keine Erwärmung mehr das Leben zurückrufen kann. Dieses Temperaturminimum liegt freilich bei den verschiedensten Organismen in sehr verschiedener Höhe. So hat, wie wir sahen, KÜHNE gezeigt, daß Amöben schon beim Einfrieren, also bei Abkühlung bis auf wenig unter 0° C sterben, während PICTET und MACFADYEN für Bakterien fanden, daß sie eine Abkühlung auf mehr als −200 bis −250° C ertragen können, ohne ihre Lebensfähigkeit zu verlieren[418]. Die Frage, ob bei der Abkühlung irgendwelcher lebendigen Substanz einmal ein Punkt erreicht wird, an dem die Lebensprozesse vollkommen stillstehen, ohne daß die Lebensfähigkeit erloschen ist, läßt sich zurzeit nicht entscheiden. Vorläufig fehlen noch die Experimente, um diese Frage sicher zu beantworten[419].
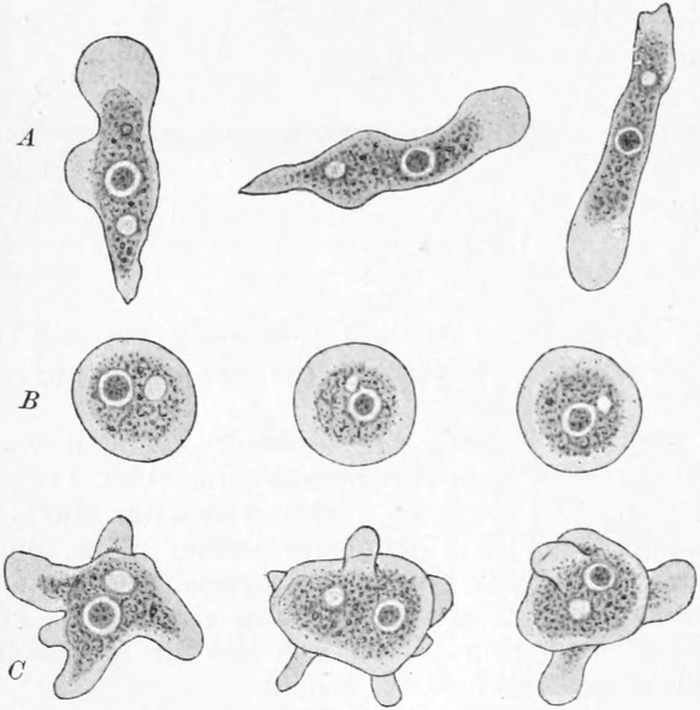
Fig. 200.
Körperformen der Amoeba limax bei verschiedenen Temperaturen
:
A
bei 25° C. Die Amöben haben langgestreckte Keulenform und zeigen lebhafte Protoplasmaströmung;
B
bei 40° C. Die Amöben haben Kugelform angenommen und verharren in Wärmestarre;
C
bei 2° C. Die Amöben zeigen einen klumpigen Zellkörper, aus dem zahlreiche kleine Pseudopodien hervorragen. Die Bewegung ist nur bei sehr langdauernder Beobachtung noch bemerkbar.
Wenn im allgemeinen die Intensität der Lebensprozesse mit sinkender Temperatur abnimmt, so darf doch nicht übersehen werden, daß es einzelne merkwürdige Fälle gibt, in denen diese Regel keine Gültigkeit zu haben scheint. So ist es seit längerer Zeit bekannt, daß die Erregbarkeit der motorischen Nerven beim Frosch deutlich zunimmt, wenn man den Frosch einige Zeit unter niedriger Temperatur hält. Auch die Erregbarkeit des Rückenmarks solcher Kaltfrösche ist ungeheuer gesteigert, wie BIEDERMANN[420] vor einigen Jahren gezeigt hat. Reizung der sensiblen Nerven, die bei Fröschen unter mittlerer Temperatur überhaupt keine Reflexbewegung hervorzurufen imstande ist, erzeugt bei Kaltfröschen unter Umständen sogar tetanische Krämpfe. Indessen haben die neueren Untersuchungen FRÖHLICHs ergeben, daß es sich hierbei nur um eine scheinbare Erregbarkeitssteigerung handelt, auf deren Genese weiter unten noch näher eingegangen werden soll. Auch an gewissen Infusorien wirkt, wie PÜTTER[421] fand, Abkühlung ungemein stark erregend. So wird z. B. bei Stylonychia die Erregung des Wimperschlages durch Abkühlung von 15° bis auf 6° zu einer sonst nie erreichbaren Höhe gesteigert, die bei 6° ihr Maximum hat, von da an aber schnell abnimmt bis zu 4°, wo bereits der Tod der Zelle durch körnigen Zerfall erfolgt. Es bleibt vorläufig unaufgeklärt, wie hier diese eigentümlichen Tatsachen zu verstehen sind. Hier sind zunächst noch weitere Erfahrungen nötig. Immerhin sind solche erregenden Wirkungen niedriger Temperaturen bisher nicht in größerer Zahl bekannt. Die gewöhnliche Wirkung von Temperaturerniedrigungen ist jedenfalls die lähmende.
Die lähmenden Wirkungen der Kälte sind aber nicht die einzigen Lähmungswirkungen, die durch Temperaturveränderungen herbeigeführt werden. Ebenso wie hohe Kältegrade, lähmen auch hohe Wärmegrade die Lebensäußerungen. Wir haben gesehen, daß eine Steigerung der Temperatur im allgemeinen zunächst erregend wirkt, und daß die Lebensprozesse bei einer Temperatur von bestimmter Höhe sogar einen stürmischen Verlauf nehmen können, wir haben aber auch bereits gesehen, daß, wenn wir über diesen Punkt noch mit der Temperatursteigerung hinausgehen, die Intensität der Lebensprozesse plötzlich außerordentlich schnell abnimmt und die Lebensäußerungen unmerkbar werden. Seeigeleier, die in Teilung oder Befruchtung sich befinden, über 30° C erwärmt, verharren in dem Moment der Veränderung, in dem sie sich gerade befanden: Amöben, über 35° C erwärmt, verharren in ihrem kugelförmigen Zustande, die Wimpern der Flimmerzellen bleiben bei der gleichen Temperatur in stark gekrümmter Stellung, d. h. im Kontraktionszustande stehen, kurz, das Protoplasma verfällt in Wärmestarre (Fig. 200 B). Werden die Objekte nach sehr kurzer Einwirkung dieser hohen Temperaturen wieder abgekühlt, so erholen sie sich langsam; dauert die Einwirkung aber zu lange, oder steigt die Temperatur noch ein wenig, so ist eine Rückkehr zum Leben ausgeschlossen.
Wärmestarre sowohl wie Kältestarre sind Lähmungsvorgänge. Es ist daher unzweckmäßig und erweckt unrichtige Vorstellungen, wenn man für Kältestarre und Wärmestarre auch den Ausdruck Kältetetanus und Wärmetetanus anwendet, wie das bisweilen geschehen ist. Die Starre ist gerade das Gegenteil vom Tetanus: Die Starre ist ein Lähmungs-, der Tetanus ein Erregungsvorgang. Ein Kälte- oder Wärmetetanus kann überhaupt nicht erzeugt werden, da zum Begriff des Tetanus das rhythmische Intermittieren des Reizes gehört, das mit Temperaturreizen wohl kaum erzielt werden kann. Eine Vermischung beider Begriffe kann daher nur zu irrtümlichen Auffassungen führen.
So ist das Leben zwischen zwei Temperaturpunkte, den Punkt der Kältestarre und den Punkt der Wärmestarre, eingeschlossen, an denen die Lebensprozesse ein Minimum haben oder ganz stillstehen. Zwischen diesen Punkten aber spielen sich die Lebensvorgänge in wahrnehmbarer Weise ab, und zwar in den meisten Fällen um so lebhafter, je mehr die Temperatur vom Punkt der Kältestarre an steigt, bis zu einem Optimum, das näher dem Punkte der Wärmestarre als dem der Kältestarre gelegen ist. Am Temperaturpunkt des Optimums ist die Intensität der einzelnen Teilprozesse des Stoffwechsels derart, daß alle diese Einzelprozesse harmonisch zusammenwirken und die Intensität des gesamten Lebensvorgangs auf der größten dauernd möglichen Höhe erhalten. Vom Optimum an steigt zwar die Intensität gewisser Teilprozesse des Stoffwechsels, vor allem der Dissimilationsprozesse mit zunehmender Temperatur noch beträchtlich weiter an, aber andere Teilprozesse des Stoffwechsels erfahren nicht die gleiche Intensitätssteigerung, teils weil nicht die genügenden Massen der zu den Reaktionen nötigen Stoffe zur Verfügung stehen, wie z. B. der Sauerstoff, teils weil sie nicht genau den gleichen Temperaturkoeffizienten haben. Auf diese Weise entstehen sehr schnell Mißverhältnisse in dem Ablauf der einzelnen Teilprozesse des Stoffwechsels, die mit steigender Temperatur und mit andauernder Einwirkung überoptimaler Temperaturen sehr schnell zum Tode führen. Hätten wir daher einen exakten Maßstab für die Intensität des Lebensvorganges in seiner Gesamtheit, so wie wir ihn für einzelne Teilprozesse haben, so würden wir den Ablauf des Lebens in seiner Gesamtheit in Form einer Kurve darstellen können, deren Abszisse die Temperatur, deren Ordinaten die Intensität angeben. Diese Kurve würde im wesentlichen die Form von Fig. 201 haben. Indessen eine solche Kurve läßt sich in mathematischer Genauigkeit eben deshalb nicht liefern, weil die einzelnen Teilprozesse des Lebensvorgangs mit zunehmender Temperatur eine verschiedene Aenderung erfahren. Diese Kurve kann also immer nur als Schema für einen bestimmten Teilprozeß gelten.
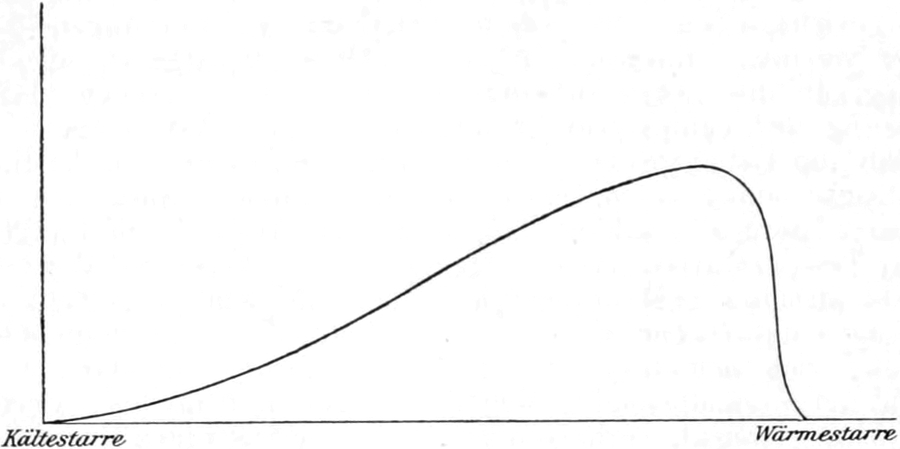
Fig. 201.
Kurve der Erregung bei steigender Temperatur
. Die Abszisse gibt die Temperatur, die Ordinaten die Erregung an.
5. Die Wirkungen strahlender Reize.
Kannte bis vor kurzer Zeit die Physiologie nur Licht- und Wärmestrahlen als Reize, so hat sich das in neuerer Zeit vollständig geändert. Die neu entdeckten Strahlenarten wie die RÖNTGEN-Strahlen und BECQUEREL-Strahlen haben sich ebenfalls als wirksam auf die lebendige Substanz erwiesen. Allerdings sind die Erfahrungen über die physiologischen Wirkungen der neuen Strahlenarten noch sehr spärlich und die Angaben zum Teil direkt widersprechend. Immerhin ist es nötig, heute außer den sehr eingehend studierten Wirkungen der Lichtstrahlen auch die bisher bekannt gewordenen Wirkungen der anderen Strahlenarten zu berücksichtigen, soweit einigermaßen gesicherte Erfahrungen darüber vorliegen.
Die Wirkungen der Lichtstrahlen.
Wenn in der Physiologie vom Lichtreiz gesprochen wird, so ist darunter nur die chemische, nicht die thermische Wirksamkeit der Lichtstrahlen verstanden. In diesem Sinne gefaßt, scheint der Lichtreiz auf den ersten Blick den anderen Reizqualitäten in gewisser Weise eigentümlich gegenüber zu stehen, insofern, als nach den bisherigen Erfahrungen nicht alle lebendige Substanz auf sichtbare Lichtstrahlen reagiert, während chemische und mechanische, thermische und galvanische Reize auf alle lebendigen Substanzen Wirkungen hervorrufen.
Bei den höheren Tieren sind es fast ausschließlich die Sinneszellen der Sehorgane, von denen wir die Fähigkeit, auf sichtbares Licht zu reagieren, kennen. Die meisten Gewebezellen sind, soweit bisher die Untersuchungen reichen, nicht für sichtbare Lichtstrahlen erregbar. Dagegen unter den Einzelligen besitzen viele, auch solche, die keine besonders für die Lichtperzeption entwickelten Organoide haben, die Fähigkeit, auf sichtbare Lichtstrahlen zu reagieren, und bei den chlorophyllhaltigen Protisten und Pflanzen schließlich ist die Lichtreizbarkeit allgemein verbreitet.
Demnach gibt es genug Zellformen, wie z. B. die Mehrzahl aller Gewebezellen und aller Wimper-Infusorien, die nach unseren bisherigen Erfahrungen durch sichtbare Lichtstrahlen, sofern deren thermische Wirkung ausgeschaltet ist, nicht im geringsten affiziert werden. Allein man hat in neuerer Zeit eine Beobachtung gemacht, die im Hinblick auf die Frage nach der Lichtreizbarkeit solcher Zellen, die bisher für unempfindlich galten, doch Beachtung verdient.
Seit der Entwicklung unserer modernen Elektrizitätstechnik hat man Mittel kennen gelernt, um elektrisches Licht von ganz ungeheurer Stärke zu erzeugen, Licht, das an Intensität die Strahlen des Sonnenlichtes weit hinter sich läßt, Licht, das mit dem Beiwort „blendend“ nicht mehr genug charakterisiert ist. „Zerstörend“ oder „zerleuchtend“ müßte man sagen, denn in Elektrizitätswerken, in denen Arbeiter solchem Lichte ausgesetzt sind, hat man mehrfach beobachtet, daß die Haut dieser Leute an den unbedeckten Körperstellen echte Nekrose-Prozesse zeigt. Die Zellen der Epidermis sterben ab, die oberen Hautschichten schälen sich, und die tieferen Hautschichten zeigen heftige Entzündungen und Geschwürsbildungen, ähnlich wie bei Verbrennungen. Und dennoch sind es nicht die thermischen Wirkungen des Lichtes, die in diesen Veränderungen zum Ausdruck kommen, sondern die chemischen Wirkungen der kurzwelligen Strahlen des Spektrums, wie man durch Zwischenschaltung von wärmeabsorbierenden Medien feststellen konnte. Es kann also kein Zweifel sein, daß wir es hier mit einer sehr starken Lichtwirkung zu tun haben an Zellen, deren lebendige Substanz durch die Intensität der Lichtstrahlen, die unter gewöhnlichen Verhältnissen die Erdoberfläche treffen, gar nicht oder nur in sehr geringem Maße affiziert wird.
Diese Tatsache ist sehr beachtenswert, denn es muß sich nunmehr die Frage erheben, ob nicht auch Zellformen, deren lebendige Substanz als ganz unempfänglich für Licht von unseren gewöhnlichen Intensitätsgraden gehalten worden ist, bei höheren Lichtintensitäten doch etwa auf den Lichtreiz reagieren, ja ob nicht schließlich alle lebendige Substanz ebenso, wie sie auf Wärme reagiert, auch durch Licht beeinflußt wird, nur in verschiedenem Grade.
Besitzt diese Vermutung an sich schon einen hohen Grad von Wahrscheinlichkeit, da ja besonders die kurzwelligen Strahlen des Spektrums sehr intensive chemische Wirkungen hervorrufen, so ist sie in neuester Zeit durch die grundlegenden Arbeiten von HERTEL[422] zur Gewißheit geworden. HERTEL hat nämlich, von dem Gedanken ausgehend, daß gerade die kurzwelligen nach dem violetten Teil des Spektrums hin gelegenen Lichtstrahlen sich durch besonders starke chemische Wirkungen auszeichnen, geprüft, ob nicht die noch kurzwelligeren ultravioletten Strahlen, die über den sichtbaren Teil des Spektrums hinausliegen, auch auf Formen der lebendigen Substanz wirken, die sonst von den sichtbaren Strahlen gar nicht beeinflußt werden. In der Tat ist ihm dieser Nachweis in glänzender Weise gelungen. Er bediente sich für seine Untersuchungen des von einem elektrischen Lichtbogen entworfenen Magnesiumspektrums, und zwar der weit im ultravioletten Teil liegenden Strahlen von 280 µµ Wellenlänge. Mit diesen Strahlen vermochte er an den verschiedenartigsten lebendigen Objekten, wie Bakterien, Infusorien, Cölenteraten, Würmern, Mollusken, Amphibien, Pflanzenzellen teils erregende, teils lähmende Wirkungen hervorzurufen. Selbst die histologischen Bestandteile des Nervensystems konnten direkt durch diese Strahlen beeinflußt werden. Es ist nun höchst interessant, daß HERTEL auch den Grund auffinden konnte, weshalb die sichtbaren Lichtstrahlen in so vielen Fällen keine Reizwirkungen hervorrufen. Er fand nämlich den Grund einfach darin, daß die langwelligeren Strahlen des Spektrums in den meisten Fällen viel weniger oder gar nicht von der lebendigen Substanz absorbiert werden. Dazu kommt noch, daß auch die Intensität eine große Rolle spielt, und daß bekanntlich im Spektrum die einzelnen Lichtstrahlenarten sehr verschiedene Intensität haben. HERTEL kommt daher zu dem Ergebnis, „daß die physiologische Wirkung der Strahlen durchaus nicht an bestimmte Spektralgebiete gebunden ist, sondern daß allgemein strahlende Energie an sich das wirksame Prinzip ist. Eine Funktion der Wellenlänge ist die physiologische Wirkung nur, weil sie natürlich einmal in bestimmtem Abhängigkeitsverhältnis steht von der in den einzelnen Spektralbezirken sehr variierenden Gesamtintensität der Strahlung und zweitens vor allem, weil die Aufnahmemöglichkeit der Strahlen durch die Organismen umgekehrt proportional der Wellenlänge ist.“
Schließlich haben die ausgezeichneten Untersuchungen HERTELs auch höchst interessante Aufschlüsse über den Chemismus der Strahlenwirkung in der lebendigen Substanz ergeben. Aus den Erfahrungen der Chemie ist bekannt, daß die chemisch wirksamen Lichtstrahlen besonders Reduktionsprozesse vermitteln, wie ja z. B. die Reduktion von Silbersalzen zeigt, die in der photographischen Technik eine so fundamentale Rolle spielt. HERTEL fragte sich daher, ob nicht etwa auch die Wirkung der Lichtstrahlen auf die lebendige Substanz in erster Linie auf Reduktionsprozessen beruhe und er konnte in der Tat durch eine glänzende Reihe von ebenso einfachen wie planmäßig ausgedachten Experimenten die Richtigkeit dieser Annahme belegen. Zunächst überzeugte er sich, daß die Strahlen von 280 µµ ebenfalls Sauerstoff leicht abgebende Verbindungen reduzieren. Er benutzte dazu das NYLANDERsche Reagens, das bekanntlich zum Nachweis von Traubenzucker verwendet wird[423]. In der Tat schwärzte sich ein Tropfen dieses Reagens bei Bestrahlung momentan. Dann prüfte er die reduzierende Wirkung seiner Strahlen an Blut. Es trat eine deutliche Reduktion des Oxyhämoglobins ein. Weiterhin suchte er Reduktionsvorgänge in lebendigen Zellen durch die Strahlen des Magnesiumlichtes auszulösen und zugleich mit einem geeigneten Indikator sichtbar zu machen. Alizarinblau färbt, wenn man es einem lebenden Tier einspritzt, gewisse Gewebezellen, wie z. B. die Zellen des Zentralnervensystems intensiv blau, ohne sie jedoch zu schädigen. Durch Reduktion wird Alizarinblau in das farblose Alizarinweiß übergeführt. Um diese Reduktion in vitro herbeizuführen, erwiesen sich die von HERTEL benutzten Strahlen nicht intensiv genug. Dagegen gelang es HERTEL zu zeigen, daß die lebenden Zellen des Gehirns von Tieren, denen Alizarinblau injiziert worden war, unter dem Einfluß der Bestrahlung der operativ freigelegten Gehirnoberfläche das Alizarinblau zu Alizarinweiß reduzierten. Diese Versuche legten es nahe, daß die Reduktion hier durch Vermittelung eines katalytisch wirkenden Stoffes erfolgt, ähnlich wie die Reduktion des Wasserstoffsuperoxyds durch Platinmoor[424] oder durch das organische Enzym „Katalase“. HERTEL prüfte daher, ob die Magnesiumstrahlen die Wirkung der Katalase auf Wasserstoffsuperoxyd etwa steigerten. Das Wasserstoffsuperoxyd direkt wird von den Strahlen, wie er sich vorher überzeugte, nicht reduziert, dagegen konnte er sofort eine lebhafte Steigerung der Gasentwicklung beobachten, wenn er die Wasserstoffsuperoxyd-Katalyse durch Katalase herbeiführte und die Flüssigkeit dann mit Magnesiumlicht bestrahlte. Daraus geht also hervor, daß die katalytische Spaltung von Wasserstoffsuperoxyd beträchtlich durch kurzwellige Lichtstrahlen gesteigert wird, wenn sie durch einen an sich schon katalytisch wirkenden Stoff in Gang gebracht ist. Alle diese Tatsachen machen es im höchsten Grade wahrscheinlich, daß die allgemeine Wirkung der Lichtstrahlen auf die lebendige Substanz in erster Linie auf einer Beeinflussung des Sauerstoffwechsels beruht.
Nach diesen allgemeinen Tatsachen mögen nun eine Reihe von speziellen Beispielen aus dem Gebiete der Lichtreizwirkungen folgen.
a) Erregungswirkungen.
Die Stoffwechsel-Wirkungen des Lichtes sind es, welche der ganzen organischen Welt, die heute die Erdoberfläche in unabsehbarer Formenfülle bevölkert, das Leben gewähren. Nicht mit Unrecht, wie wir sahen, haben die alten Naturphilosophen in gewissem Sinne die Tiere als Parasiten der Pflanzenwelt charakterisiert. Zwar nähren sich die Fleischfresser von tierischen Stoffen, aber diese tierische Nahrung stammt von Pflanzenfressern, und so sind auch die Fleischfresser auf die Pflanzenwelt angewiesen. Die Pflanzenwelt aber kann nicht existieren ohne die Einwirkung des Lichtes. Die Sonnenstrahlen liefern den Reiz, der die Chlorophyllkörper der Pflanzenzelle veranlaßt, die Kohlensäure der Luft in Kohlenstoff und Sauerstoff zu spalten und aus dem Kohlenstoff mit dem durch die Wurzeln aufgenommenen Wasser synthetisch die erste organische Substanz, das erste Produkt des assimilatorischen Stoffwechsels, die Stärke, zu erzeugen. Noch mehr. Die Sonnenstrahlen geben auch den Anstoß zur Entstehung des grünen Chlorophyllfarbstoffes selbst, wie aus der Tatsache hervorgeht, daß Pflanzensamen, die man im Dunkeln keimen läßt, ein weißes oder ein hellgelbes Pflänzchen entwickeln, das zwar auf Kosten der in den Pflanzensamen aufgespeicherten Reservestoffe eine Zeitlang wächst, das aber erst ergrünt, wenn es dem Lichte ausgesetzt wird. Erst nach dem Ergrünen ist die Pflanze imstande, Kohlensäure zu spalten und Stärke zu bilden. So ist die Entstehung des ersten organischen Produktes, aus dem alle andere organische Substanz sich herleitet, die Wirkung des Lichtreizes der Sonnenstrahlen.
Diese assimilatorische Wirkung des Sonnenlichtes kommt nicht allen Lichtstrahlen in gleichem Maße zu. Wie wir bereits an anderer Stelle[425] gesehen haben, sind es die Strahlen des roten Lichtes, die von allen bei gleicher Intensität die stärkste assimilatorische Wirkung entfalten.
Von den objektiv wahrnehmbaren Wirkungen des Lichtes auf die Netzhautzellen im Auge des Menschen und der Tiere ist bis jetzt zum größten Teil noch nicht sicher, ob sie auf direkter Reizung der betreffenden Zellen selbst oder auf reflektorischer Erregung durch das Nervensystem beruhen: immerhin müssen direkte Stoffwechselwirkungen in den Retinazellen vorhanden sein, da wir ihre Folgen im Zentralnervensystem, auf das sich die Erregung durch den Sehnerven fortpflanzt, subjektiv als Farben empfinden und objektiv bei anderen Menschen oder Tieren an den Bewegungsreaktionen erkennen, die bei Lichtreizung durch Vermittlung des Zentralnervensystems ausgelöst werden.
Ueber die erregenden Wirkungen des Lichtes auf die Formbildungsprozesse sind, abgesehen von der Beeinflussung des Wachstums der Pflanzen, bisher noch keine umfangreicheren Erfahrungen bekannt geworden.
Dagegen kennen wir zahlreiche Wirkungen auf den Energieumsatz, vor allem auf die Bewegungsvorgänge.
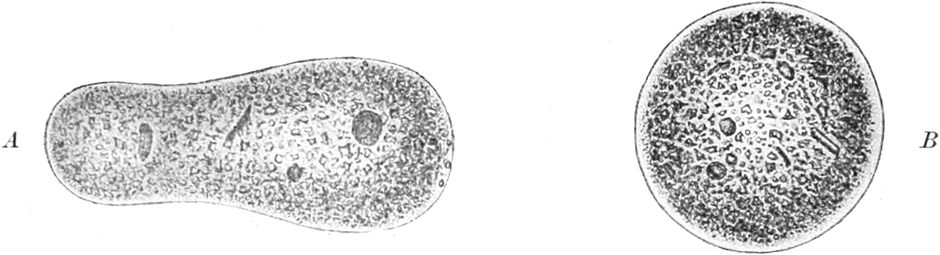
Fig. 202. Pelomyxa palustris. A Ungereizt kriechend, B gereizt kontrahiert.
Im Süßwasser einzelner Teiche und Pfützen, verborgen zwischen Schlamm und Sand, führt in mattem Dämmerlicht ein unbeholfenes Rhizopod sein träges Dasein, die amöbenähnliche Pelomyxa. Der klumpige, nackte, nicht selten fast 2 mm große Protoplasmakörper dieses merkwürdigen Wesens enthält neben einer großen Anzahl runder Zellkerne eine Fülle von kleinen Sandkörnchen und Schlammteilchen, so daß er völlig undurchsichtig ist. Die Bewegungen der Pelomyxa sind genau die einer trägen Amöbe. Der klumpige Protoplasmatropfen läßt ab und zu hier und dort ein flaches, hyalines Pseudopodium über den dunklen Körperkontur meist ruckweise vorfließen, in das dann die Innenmasse mit ihren Kernen, Sandkörnchen etc. nachströmt. In der Regel bildet sich, wenn man das Protist ungestört sich selbst überläßt, nach einiger Zeit wie bei Amoeba limax[426] eine bestimmte Kriechrichtung heraus, so daß das Protoplasma nur immer in einer Richtung vorfließt, und der Körper dadurch eine langgestreckte Gestalt annimmt (Fig. 202 A). Wird aber die Pelomyxa beim Kriechen mechanisch durch Erschütterung oder chemisch durch Zusatz von Salzlösungen oder thermisch durch Erwärmen gereizt, so kontrahiert sie sich sofort und nimmt, wie alle nackten Protoplasmamassen, Kugelform an (Fig. 202 B). An diesem originellen Wesen konnte ENGELMANN[427] eine ausgesprochene Lichtreizbarkeit feststellen, und zwar zeigte sich, daß, wenn die Pelomyxa im Dunkeln ungestört in ihrer langgestreckten Form träge dahinkroch, eine plötzliche Belichtung denselben Reizerfolg hatte, wie ihn die chemische, mechanische und thermische Reizung hervorruft. Der Protoplasmakörper kontrahierte sich plötzlich zur Kugel, und alle Bewegung hörte auf, um aber bei Verdunkelung alsbald wieder von neuem einzutreten. Langsame Steigerung der Lichtintensität vom Dunkeln an hatte dagegen keinen deutlichen Einfluß. Ganz ähnlich verhalten sich auch die Protoplasmamassen mancher Myxomyceten, die ebenfalls auf Lichtreizung Kontraktionsbewegungen beobachten lassen.
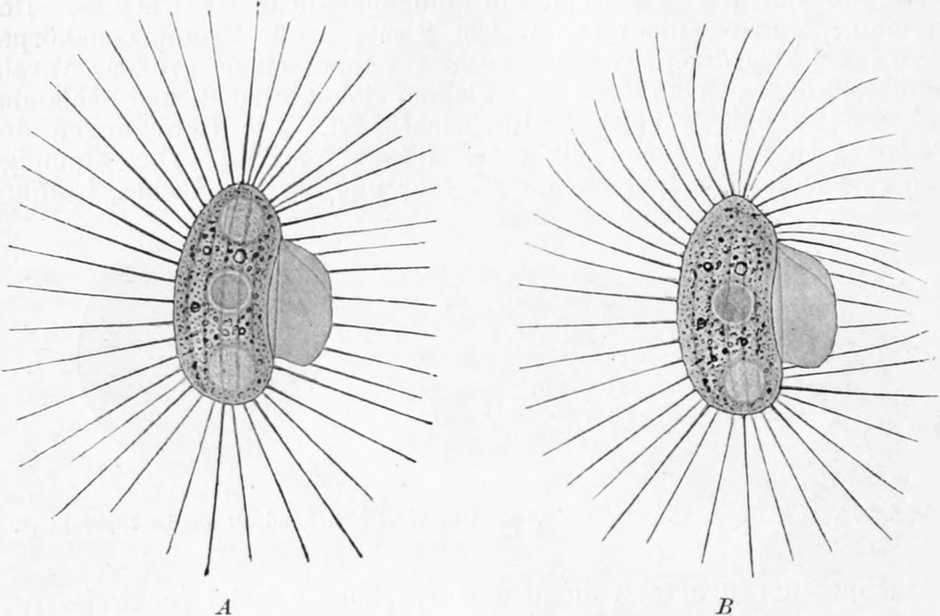
Fig. 203.
Pleuronema chrysalis
.
A
Ungereizt, still liegend,
B
gereizt, im Begriff, durch Wimperschlag zu springen.
ENGELMANN, der sich viele Verdienste um die Physiologie der einzelligen Organismen erworben hat, entdeckte auch ein eigentümliches Bakterium, das sich als außerordentlich empfänglich für Lichtreize erwies. Dieses Bakterium, das ENGELMANN[428] Bacterium photometricum nannte, bewegt sich durch den Schlag des Geißelfadens, den die Enden des beweglichen Bakterienkörpers tragen, lebhaft im Wassertropfen umher. Allein diese Bewegung dauert nur so lange, als das Bakterium der Einwirkung des Lichtes ausgesetzt ist. Wird es dagegen ins Dunkle gebracht, so hört allmählich die Bewegung auf, und das Bakterium bleibt still liegen. Sobald aber wieder Licht einwirkt, beginnt die Bewegung der Bakterien von neuem, und zwar konnte ENGELMANN mittels eines Spektralapparates feststellen, daß es die Strahlen des Orange und des Ultrarots sind, die besonders diese erregende Wirkung auf die Bewegung der Bakterien ausüben.
Bei zahlreichen pathogenen Bakterien, wie bei Bacterium coli, Typhusbakterien, Choleravibrionen, Vibrio Metschnikovii, Bacillus prodigiosus, Bacillus proteus mirabilis fand HERTEL[429] im Beginn der Einwirkung seiner ultravioletten Strahlen von 280 µµ Wellenlänge eine Beschleunigung der Bewegung, die aber in wenigen Sekunden einer völligen Lähmung wich. Jedenfalls dürfte sich wohl durch Strahlen von geringerer Intensität wie auch durch Strahlen von größerer Wellenlänge hier auch ein länger andauerndes Erregungsstadium erzielen lassen.
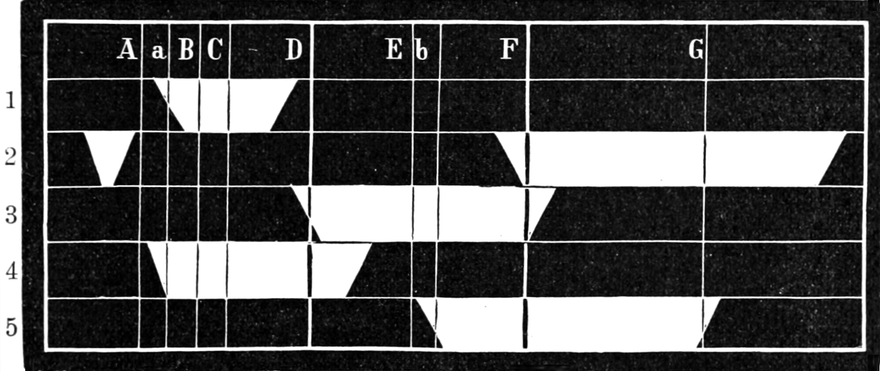
Fig. 204.
Spektra von verschiedenen Medien
. 1 Spektrum eines roten Glases, 2 Spektrum eines Kobaltglases, 3 Spektrum eines grünen Glases, 4 Spektrum einer Kalibichromatlösung, 5 Spektrum einer Kupferoxyd-Ammoniaklösung.
Auch unter den Wimperinfusorien, die sich für sichtbare Strahlen im allgemeinen bisher als nicht reizbar gezeigt haben, finden sich vereinzelte Vertreter, deren Wimperbewegung durch sichtbare Lichtstrahlen erregt wird. Wir lernten schon bei anderer Gelegenheit[430] Pleuronema chrysalis kennen, das in ungestörtem Zustande still im Wasser liegt, ohne seine langen Sprungwimpern zu bewegen, und nur von Zeit zu Zeit durch einen plötzlichen Schlag derselben einen schnellen Sprung ausführt. Wenn diese kleinen Infusorien, die man in der Regel in größerer Menge zusammen beobachtet, an einer Stelle auf dem Objektträger still liegen, so kann man schon bei gewöhnlichem Tageslicht durch Wegnahme der Blende des Mikroskops eine Sprungbewegung auslösen, die sich öfter wiederholt, wenn die Blende nicht wieder eingeschoben wird[431]. Wie eine Herde aufgeregter Flöhe springen diese Wimperzellen wild durcheinander, bis sie wieder beschattet werden. Dabei tritt die Schlagbewegung der Wimpern nicht unmittelbar in dem Momente ein, in dem das Licht plötzlich auffällt, sondern erst nach einem Stadium latenter Reizung, das etwa 1–2 Sekunden dauert. Durch Einschalten von farbigen Gläsern und Flüssigkeiten zwischen Lichtquelle und Objekttisch des Mikroskops, und zwar von solchen, deren Durchlässigkeit für Strahlen ganz bestimmter Wellenlänge spektroskopisch vorher festgestellt worden ist (Fig. 204), kann man sich leicht überzeugen, daß es nicht etwa eine Wärmewirkung des Lichtes ist, die in dieser Sprungbewegung zum Ausdruck kommt, sondern daß es gerade die Strahlen des blauen und violetten Lichtes, also die thermisch am wenigsten wirksamen Strahlen, sind, die diese Reizwirkung am stärksten hervorrufen. Auch durch Wärmestrahlen freilich kann man dieselbe Wirkung erzielen, aber dann reicht nicht das gewöhnliche Tageslicht dazu aus, sondern es bedarf Sonnenlichtes von größerer Wirksamkeit, wie man es nur durch Konzentration direkten Sonnenlichtes mittelst eines Hohlspiegels erhalten kann, um die Sprungbewegung auszulösen.
Durch die kurzwelligen Strahlen des unsichtbaren Teiles des Spektrums konnte HERTEL[432] bei allen untersuchten Infusorienformen im Beginn der Einwirkung erregende Wirkungen erzielen. So wurden die Wimperbewegungen von Paramaecium und Colpidium und einiger anderer holotricher Infusorienformen zuerst unruhiger und hastiger, bis sie sehr bald starke Koordinationsstörungen erfuhren und ganz gelähmt wurden. Bei Stentor polymorphus, Carchesium und Epistylis traten unter dem Einfluß der ultravioletten Strahlen von 280 µµ heftige Kontraktionen der Myoide ein, bis auch diese Infusorien bei weiterer Einwirkung der Strahlen völlig gelähmt waren.
Von der Bewegung der quergestreiften Muskeln ist bisher kein Fall bekannt geworden, in dem sich eine Beeinflussung durch Licht mit Sicherheit ergeben hätte. Dagegen hat STEINACH[433] vor einiger Zeit gezeigt, daß gewisse glatte Muskelfasern durch Lichtreize zur Kontraktion gebracht werden können. Der Sphincter iridis bei Fischen und Amphibien, ein Muskel, der die Pupille des Auges durch seine Kontraktion verengert, ist, wie STEINACH fand, zusammengesetzt aus glatten Muskelfasern, die ein braunes Pigment enthalten. Die glatten Muskelfasern werden durch Licht direkt ohne Vermittlung des Zentralnervensystems erregt, wie daraus hervorgeht, daß selbst der herausgeschnittene Muskel noch durch Belichtung zur Zusammenziehung veranlaßt werden kann.
Ebenso wie die Kontraktionsbewegungen in manchen Fällen durch den Lichtreiz erregt werden, kann auch die eigentümliche Bewegung der Diatomeen in gewissem Sinne vom Lichte beeinflußt werden. Wie ENGELMANN[434] gefunden hat, hören die eigentümlichen Bewegungen der Diatomeen auf, wenn man sie unter Sauerstoffabschluß in einem dunklen Raum aufstellt. Sie beginnen aber alsbald wieder, wenn man Licht auf sie einwirken läßt. Dieses Verhalten ist, wie ENGELMANN zeigte, darauf zurückzuführen, daß unter Sauerstoffabschluß der zur Bewegung der Diatomeen nötige Sauerstoff bald verbraucht wird. Befinden sich diese Algenzellen nun im Dunkeln, so stellen sie alsbald infolge des Sauerstoffmangels ihre Bewegungen ein; werden sie dagegen ins Licht gebracht, so spalten sie mittels ihres dem Chlorophyll verwandten gelben Farbstoffs Kohlensäure und produzieren sich auf diese Weise den Sauerstoff, den sie zur Bewegung nötig haben, selbst, so daß sie ihre Bewegungen von neuem wieder aufnehmen können.
Sehr interessant sind schließlich die Untersuchungen HERTELs[435] über die Einwirkung von Lichtstrahlen auf die histologischen Elemente des Nervensystems. Bei lokaler Belichtung einer Partie des Bauchstranges vom Regenwurm mit ultravioletten Strahlen von der Wellenlänge 280 µµ beobachtete HERTEL in der von dieser Partie aus innervierten Muskulatur heftige Kontraktionen. Bei dem gleichen Versuch mit sichtbaren Lichtstrahlen dagegen war keinerlei Wirkung zu sehen. HERTEL war nun sehr überrascht, als er bei dem Wurme Sipunculus bei Belichtung sowohl mit ultravioletten wie auch mit sichtbaren Lichtstrahlen eine deutliche Reizwirkung vom Nervensystem aus erzielte. Die Erklärung für dieses verschiedene Verhalten der beiden Wurmformen ergab sich aus den histologischen Verhältnissen. Sipunculus hat große Mengen von Pigment im Nervensystem, der Regenwurm nicht. Es ist also hier offenbar das Pigment der Faktor, der bei Sipunculus durch die Absorption des Lichtes die Wirksamkeit auch der langwelligen, sichtbaren Strahlen vermittelte, die beim Regenwurm von den pigmentlosen Bestandteilen des Bauchstranges in der verwendeten Intensität des Lichtes nicht oder nicht in genügendem Maße absorbiert werden.
b) Lähmungswirkungen.
Bis in die letzten Jahre war von lähmenden Wirkungen des Lichtes nur wenig bekannt, und bei dem wenigen, was bekannt war, blieb es auch noch zum Teil zweifelhaft, ob es sich dabei um wirkliche Lähmungswirkungen des Lichtes handelte.
So könnte man z. B. die Tatsache, daß das Wachstum der Pflanzen im Licht ein geringeres ist als im Dunkeln, für eine Lähmungswirkung halten; man könnte sich vorstellen, daß das Licht direkt gewisse Stoffwechselprozesse, die zum Wachstum notwendig sind, herabsetzt. Allein das Wachstum der Pflanzen ist ein sehr komplizierter Vorgang, bei dem viele verschiedene Faktoren eine Rolle spielen, und wie bereits SACHS[436] hervorgehoben hat, ist es zurzeit noch nicht möglich, zu beurteilen, wie weit das Licht als solches in das Zustandekommen dieses Komplexes eingreift.
Eine andere Lähmungswirkung des Lichtes könnte man in seinem Einfluß auf die Lichtproduktion mancher leuchtender Seetiere suchen. Es ist nämlich mehrfach die Angabe gemacht worden, daß pelagische Tiere, wie Ctenophoren, Siphonophoren etc., aus dem Hellen ins Dunkle gebracht, nicht leuchten und erst, nachdem sie einige Zeit im Dunkeln gestanden haben, durch Reize zu einer anfangs schwachen, später stärkeren Lichtentwicklung veranlaßt werden können. Die Lichtproduktionsfähigkeit dieser Organismen scheint also durch Lichteinwirkung gelähmt zu werden, und da sich auch die einzelligen Noktiluken ebenso verhalten sollen, so dürfen wir nicht annehmen, daß es sich um eine sekundäre Wirkung des Lichtes handelt, die erst durch Sinnesorgane und Zentralnervensystem vermittelt würde. Allein auch dieser Fall einer lähmenden Wirkung des Lichtes ist noch recht unsicher, da die fragliche Tatsache zwar von mehreren Autoren beobachtet, aber bisher noch niemals näher analysiert worden ist.
Bei diesen wenigen Fällen handelte es sich ausschließlich um die Wirkungen der sichtbaren Strahlen des Spektrums. Ganz anders wurde nun unsere Kenntnis von den lähmenden Wirkungen des Lichtes durch die bereits mehrfach genannten Versuche HERTELs mit unsichtbaren ultravioletten Strahlen von 280 µµ Wellenlänge. Hier zeigte sich mit einem Male, nicht nur, daß alle untersuchten Organismen auf diese Strahlen stark reagierten, sondern ganz übereinstimmend auch, daß diese Strahlen bei genügender Intensität oder etwas längerer Einwirkung allgemein lähmende Wirkungen auf alle lebendige Substanz hervorrufen, die in kurzer Zeit zum Tode führen. Nach einem kurzen Erregungsstadium, das HERTEL in einzelnen Fällen beim Beginn der Bestrahlung beobachtete, trat sofort vollkommene Lähmung ein. So fand HERTEL[437] bei den gesamten oben genannten Bakterien und Infusorien, ferner bei Pflanzenzellen, bei Diatomeen etc. eine schnell eintretende Lähmung der Bewegung. Die Formbildungsprozesse werden ebenfalls gelähmt. Im Gegensatz zu DRIESCH, der keinerlei Einfluß der Lichtstrahlen auf Eier von Echinus, Planorbis, Rana feststellen konnte, weil er nur mit sichtbaren Lichtstrahlen experimentierte, fand HERTEL, daß durch seine ultravioletten Strahlen der Furchungsprozeß befruchteter Seeigeleier (Echinus microtuberculatus) stark gelähmt wird.
Da sich herausgestellt hatte, daß die Wirkungslosigkeit der sichtbaren Lichtstrahlen, abgesehen von der Intensität, im wesentlichen darauf beruht, daß sie von den betreffenden Objekten nicht absorbiert werden, so suchte HERTEL Seeigeleier für sichtbare Lichtstrahlen zu „sensibilisieren“, indem er sie mit einem roten Farbstoff, dem Eosin belud, der ohne Schädigung des Protoplasmas von den lebenden Eizellen aufgenommen wird. Der Versuch gelang. Die so „sensibilisierten“ Eizellen werden nunmehr auch von den sichtbaren Lichtstrahlen in ihrer Entwicklung gehemmt, ein vollkommenes Analogon zu dem von der Natur angestellten Experiment am Nervensystem des Sipunculus, bei dem das natürliche Pigment die nervösen Elemente sensibilisiert hat (vergl. oben p. 475).
Die Untersuchungen von HERTEL eröffnen hier ein außerordentlich weites Feld für weitere Versuche über die physiologischen Reizwirkungen des Lichts und die Bedeutung des Pigments, und so ist zu erwarten, daß uns die nächste Zukunft eine große Reihe neuer und wichtiger Erfahrungen nach dieser Richtung hin bringen wird.
Die Wirkungen der RÖNTGEN-Strahlen.
Im Anschluß an die Wirkungen der Lichtreizung mögen zunächst die Erfahrungen Erwähnung finden, die in neuerer Zeit bei Einwirkung der unsichtbaren RÖNTGENschen Strahlen auf Organismen gemacht worden sind. Es hat sich seit der Entdeckung dieser Strahlenarten eine ganze Reihe von Angaben über ihre Wirkung auf Organismen angehäuft, die aber zum großen Teil mit vorsichtiger Kritik aufzunehmen sind. Es sollen daher hier nur einige der zuverlässigeren Beobachtungen angeführt werden.
So hat z. B. RIEDER[438] größere Versuchsreihen mit Reinkulturen von verschiedenen Bakterienarten in der Weise angestellt, daß er die Plattenkulturen mit Hilfe eines durchbohrten Bleischirms einer partiellen Bestrahlung durch RÖNTGENsche Strahlen aussetzte. Dabei fand er, daß z. B. Kolonien von Cholera- und Tuberkelbazillen schon nach einer Expositionsdauer von kaum einer Stunde zugrunde gegangen waren, während die Kolonien an den nicht exponierten Stellen der Platte weiter wuchsen.
An Pflanzenzellen stellte LOPRIORE[439] Versuche mit RÖNTGEN-Strahlen an, bei denen sich ergab, daß die Protoplasmabewegung in den Zellen der Vallisneria anfangs beschleunigt wird. Bei längerer Exposition machten sich indessen Veränderungen in der Struktur des Protoplasmas bemerkbar, indem dasselbe körniger und vakuolenreicher wurde, während die Chlorophyllkörper ihre grüne Farbe verloren.
Ferner hat vor einigen Jahren R. HERTWIG[440] an einer größeren Anzahl von Rhizopoden- und Infusorienformen die Wirkung der RÖNTGEN-Strahlen studiert und gefunden, daß diese Strahlen auf die verschiedenen Formen in ganz verschiedenem Grade wirksam sind. Während bei manchen Rhizopoden, wie z. B. Labyrinthula und Hyalopus, selbst bei 14-stündiger Expositionsdauer keinerlei Wirkung zu beobachten war, reagierten andere, wie z. B. Amoeba princeps, Pelomyxa palustris, Difflugia pyriformis, Polystomella, Actinosphaerium etc. nach kürzerer oder längerer Exposition dadurch, daß sie ihre Pseudopodien einzogen und schließlich in totaler Kontraktion abstarben. Bei manchen flagellaten und ciliaten Infusorien wurde die Bewegung der Geißeln und Wimpern allmählich gelähmt, bis sie abstarben. Spirostomum ambiguum blieb dabei vollkommen ausgestreckt und starb ohne Kontraktion seiner Myoidfäden, während es bei Einwirkung anderer Reize gewöhnlich sofort heftige Kontraktionsbewegungen ausführt. Vermutlich ist das Ausbleiben derselben bei der Bestrahlung mit RÖNTGEN-Strahlen auf die außerordentlich langsam sich entwickelnde Wirkung zurückzuführen.
Sodann haben JOSEPH und PROWAZEK[441] Versuche mit kurzdauernder Einwirkung von RÖNTGEN-Strahlen auf verschiedene Organismen angestellt und dabei gefunden, daß manche freibeweglichen Organismen wie Paramaecium und Daphnia sich von der Einfallsrichtung der RÖNTGEN-Strahlen fortbewegen. Auch konnten sie eine Lähmung resp. Schädigung der Funktionen des Protoplasmas in den Zellen feststellen, wie z. B. der Strömung des Protoplasmas in Pflanzenzellen, der Frequenz der Vakuolenpulsationen in Infusorienzellen etc. Im allgemeinen gingen bei ihrer kurzen Einwirkungsdauer der Strahlen die Schädigungen nach Abstellung der RÖNTGEN-Strahlen wieder zurück.
ASCHKINASS und CASPARI[442] dagegen fanden bei Bestrahlung von Kulturen des Micrococcus prodigiosus mit RÖNTGEN-Strahlen keinerlei Wirkung. Das Wachstum und die Lebensfähigkeit der Kulturen wurde in keiner Weise durch die Bestrahlung beeinflußt.
So sind die vorliegenden Untersuchungen über die Wirkung der RÖNTGEN-Strahlen bisher noch wenig geeignet, eine Gesetzmäßigkeit erkennen zu lassen und ein genaueres Studium der Frage, wieweit die RÖNTGEN-Strahlen erregend oder lähmend wirken, welche Rolle ihre Intensität spielt, ob sie bei starker Intensität auf alle lebendige Substanz wirksam sind usf., bleibt der Zukunft vorbehalten.
Die Wirkungen der BECQUEREL-Strahlen.
Auch über die physiologischen Wirkungen der von den radioaktiven Stoffen wie Uran-, Thorium-, Radium-, Barium- und Poloniumpräparaten entsendeten Strahlenarten sind die gesicherten Erfahrungen noch so wenig zahlreich, daß eine bestimmte Gesetzmäßigkeit sich aus ihnen bisher noch nicht entnehmen läßt. Die Widersprüche, die zum Teil noch in den Beobachtungsergebnissen zum Ausdruck kommen, dürften wohl zum großen Teil darauf zurückzuführen sein, daß die verschiedenen Untersucher sehr verschiedenartige Präparate benutzt haben, die jedenfalls sehr verschiedene Strahlenarten lieferten und außerdem sehr verschiedene Intensität der Strahlen besaßen. Im allgemeinen aber scheinen die meisten der unter dem Namen der BECQUEREL-Strahlen zusammengefaßten Strahlenarten sehr starke physiologische Wirkungen hervorzurufen, die an die Wirkungen der ultravioletten Lichtstrahlen von sehr geringer Wellenlänge erinnern, denn die lebendige Substanz wird bei stärkerer und längerer Bestrahlung stark geschädigt.
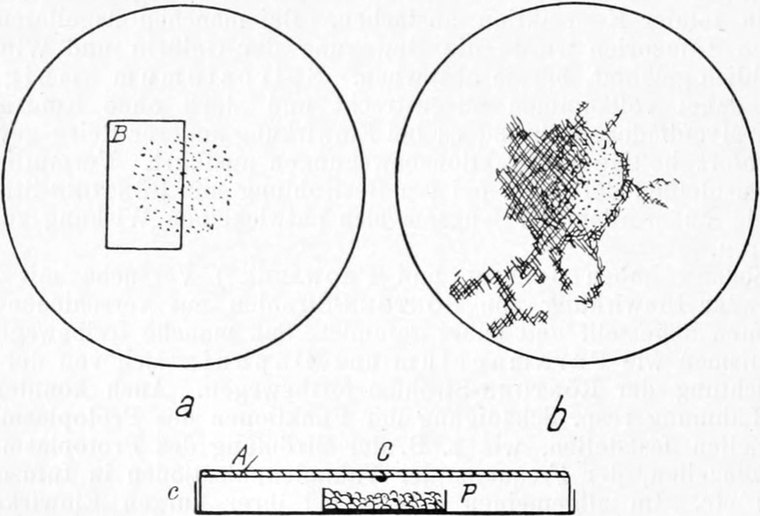
Fig. 205.
Bestrahlung von Micrococcus prodigiosus mit
B
ECQUEREL
-
Strahlen
.
a
In der Mitte der Schale befindet sich die Bakterienkultur, die zur Hälfte mit einem Kupferblech
B
gegen die Einwirkung der Strahlen geschützt ist.
b
Auf dem geschützten Teil der Kultur haben sich die Bakterien weiter entwickelt, auf dem bestrahlten Teil nicht.
c
Anordnung zur Bestrahlung von der Seite gesehen;
A
Nährgelatine auf der Innendecke der oberen P
ETRI
-Schale,
C
Bakterienkulturtropfen in der Mitte der Nährgelatine,
P
Messingschälchen mit dem Radiumpräparat am Boden der unteren P
ETRI
-Schale, der hängenden Kultur gegenüberstehend. Nach A
SCHKINASS
und C
ASPARI
.
Bei Micrococcus prodigiosus konnten ASCHKINASS und CASPARI[443] in sehr sorgfältigen Untersuchungen, die mit Berücksichtigung aller Fehlerquellen ausgeführt wurden, eine wachstums- und entwicklungshemmende Wirkung der BECQUEREL-Strahlen feststellen. Aus den zahlreichen Versuchen, die diese Forscher anstellten, sei hier nur der folgende angeführt. Sie brachten in ein breites ineinander stülpbares Glasschalenpaar (sog. PETRI-Schalen) auf den Boden der unteren Schale ein offenes Messingschälchen mit dem radioaktiven Präparat P, das aus 1 g Barium-Radium-Bromidkristallen bestand und befestigten an der Innendecke der oberen Schale eine Nähragarplatte A, die in ihrer Mitte, dem Radiumpräparat gegenüber, eine Micrococcus-Kultur C enthielt. Setzten sie dann diese Kultur der Bestrahlung aus, so fand sich nach mehrstündiger Einwirkung stets eine ganz enorme Entwicklungshemmung der bestrahlten Kultur gegenüber den der Bestrahlung nicht ausgesetzten, gleichzeitig angelegten Kontrollkulturen. Bei Zwischenschaltung einer dünnen Aluminiumfolie zwischen das radioaktive Präparat und die Kultur blieb der Erfolg aus, obwohl die eine Art von BECQUEREL-Strahlen auch jetzt noch die Kultur traf. Es waren also speziell die leichter absorbierbaren Strahlen, welche die entwicklungshemmende Wirkung ausübten. Schützten ASCHKINASS und CASPARI die Kultur zur Hälfte durch ein übergelegtes Kupferblech B, das die BECQUEREL-Strahlen nicht durchließ, so entwickelte sich auf der beschatteten Seite die Kultur weiter, während sie auf der bestrahlten Seite in ihrer Entwicklung zurückblieb (Fig. 205).
Mit einer ganzen Reihe von verschiedenen Präparaten, die teils primär radioaktiv, teils sekundär induziert waren, hat dann bald darauf H. VON BAEYER[444] die Ergebnisse von ASCHKINASS und CASPARI an der gleichen Bakterienform bestätigt und ebenfalls gefunden, daß speziell die leicht absorbierbaren α-Strahlen, sei es, daß sie von primär aktiven, sei es, daß sie von induzierten Präparaten stammten, bakterizide Wirkungen entfalten.
Schließlich haben PFEIFFER und FRIEDBERGER[445] bei Typhus-, Cholera- und Milzbrandbakterien nach längerer Bestrahlung (16 Stunden bis 3 Tage) ebenfalls eine bakterizide Wirkung feststellen können.
Es ist zu erwarten, daß die nächsten Jahre die Erfahrungen beträchtlich erweitern werden, besonders auch mit Rücksicht auf die Frage, ob außer diesen lähmenden Wirkungen nicht durch schwächere oder kürzer dauernde Bestrahlung bei geeigneten Objekten etwa auch erregende Anfangswirkungen zu erzielen sind. Es ist im höchsten Grade wahrscheinlich, daß hier ein ganz analoges Verhältnis vorliegt, wie bei der Wirkung der kurzwelligen Lichtstrahlen, die bei kurzer oder schwacher Einwirkung ebenfalls eine erregende, bei länger dauernder und stärkerer Einwirkung stets eine lähmende ist.
6. Die Wirkungen elektrischer Reizung.
Der elektrische Reiz steht den anderen Reizqualitäten in mancher Beziehung eigenartig gegenüber. Einerseits kommt der elektrische Reiz wohl in der freien Natur nur in Ausnahmefällen mit den lebendigen Organismen in Berührung, was sonst nur noch von manchen chemischen Reizen gilt. Andererseits aber besitzt er mancherlei Eigenschaften, die seine Anwendung auf die lebendige Substanz ganz besonders leicht und bequem gestalten. Der elektrische Reiz läßt sich so bequem wie kein anderer in seiner Intensität abstufen, mit einer Feinheit, die den höchsten Anforderungen entspricht. Ferner läßt er sich zeitlich auf jede beliebige Weise in seiner Anwendung begrenzen. Diese großen Vorzüge, die mit der genial entwickelten elektrischen Reizmethodik ihre höchste methodische Bedeutung erlangt haben, sind der Anlaß dafür geworden, daß man in der gesamten Physiologie überall, wo es sich um die Untersuchung von Reizwirkungen auf Zellen, Gewebe, Organe handelt, fast ausschließlich den elektrischen Reiz verwendet. So ist in der physiologischen Forschung der elektrische Reiz zum Reiz „par excellence“, zum alleinherrschenden Reiz geworden.
Von den verschiedenen Methoden Elektrizität zu gewinnen (Reibung, Influenz, Berührung, Induktion), wendet man zu Reizzwecken in der Physiologie fast allein den durch Berührung oder Induktion gewonnenen galvanischen Strom an, weil dieser durch seine Konstanz und Zuverlässigkeit, durch seine bequeme Handhabung und Anwendbarkeit, durch seine feine Abstufbarkeit an Intensität und Dauer die größten Vorteile bietet. Da die Methodik der galvanischen Reizung sich aber bis zu einer überaus großen Feinheit entwickelt hat, wird es zweckmäßig sein, erst kurz auf einige der wichtigsten Apparate einzugehen.
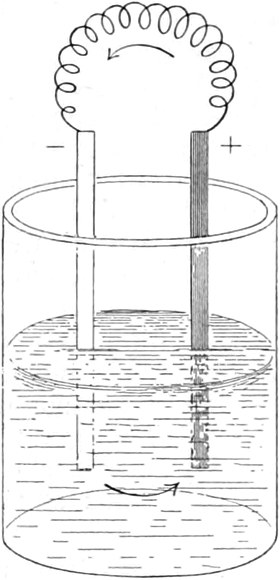
Fig. 206.
Galvanisches Element
. Der freie Zinkpol (−) ist mit dem freien Kupferpol (+) durch einen Draht verbunden, so daß ein Stromkreis entsteht in dem die Richtung des Stromes durch die Pfeile angegeben ist.
Wie wir bereits a. a. O.[446] sahen, entsteht eine galvanische Spannung, wenn wir zwei Streifen von verschiedenartigen Metallen oder gewissen anderen Körpern mit je einem Ende in eine schwach angesäuerte Flüssigkeit eintauchen. Haben wir z. B. einen Streifen von Kupfer und einen Streifen von Zink, die mit ihren unteren Enden in ein Gefäß mit verdünnter Schwefelsäure tauchen, während die oberen Enden frei in die Luft ragen, so haben wir die primitivste Form eines galvanischen Elements (Fig. 206), in welchem zwischen den freien Enden des Zinks und Kupfers eine Spannung besteht in der Weise, daß sich das freie Kupferende elektrisch positiv, das freie Zinkende elektrisch negativ verhält. Verbinden wir die beiden freien Metallenden durch einen metallischen Leiter, z. B. einen Draht, so kann sich in dem Moment, wo diese Verbindung hergestellt wird, die elektrische Spannung ausgleichen. Da sie aber an der Berührungsstelle der Metalle mit der Flüssigkeit immer wieder von neuem entsteht, so resultiert auf diese Weise eine kontinuierliche Ausgleichung der Spannung, die wir als einen konstanten galvanischen Strom bezeichnen. Die Kontinuität von Kupfer, Draht, Zink, Flüssigkeit, Kupfer bildet gewissermaßen einen geschlossenen Kreis, in dem der Strom fließt. Dieser galvanische Strom hat immer die gleiche Richtung; er fließt, wenn wir die außerhalb der Flüssigkeit befindlichen Enden der Metalle ins Auge fassen, vom Kupfer, dem positiven Pole, durch den Draht zum Zink, dem negativen Pole. In der Flüssigkeit selbstverständlich umgekehrt: vom Zink durch die Flüssigkeit wieder zum Kupfer zurück. Da wir aber konventionell immer die außerhalb der Flüssigkeit befindlichen Pole als positiven und negativen Pol bezeichnen, so ist jeder Irrtum ausgeschlossen: das Kupfer ist der positive, das Zink der negative Pol, oder, wie wir, um die Stromesrichtung im Namen zum Ausdruck zu bringen, auch sagen, das Kupfer (+) ist die Anode, das Zink (−) die Kathode.
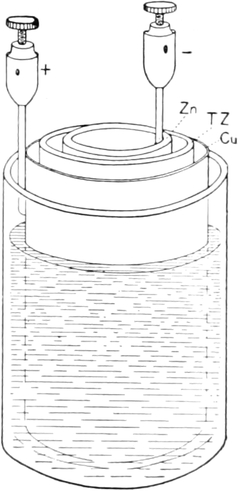
Fig. 207.
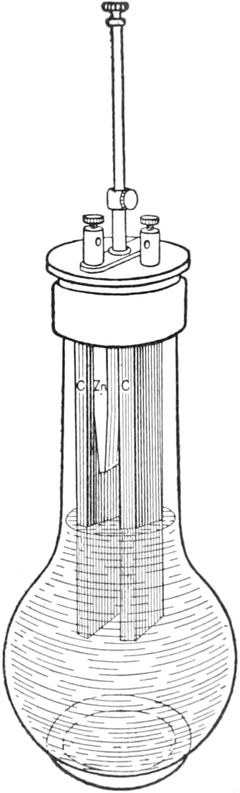
Fig. 208.
Fig. 207. DANIELLsches Element. Zn zylinderförmige Zinkplatte, TZ Tonzelle, Cu zylinderförmige Kupferplatte.
Fig. 208. Chromsäure-Tauchelement. C Kohle, Zn Zink. Die Zinkplatte ist aus der Chromsäurelösung herausgezogen.
Diese Form des primitiven galvanischen Elements, wie sie z. B. in geringer Modifikation dem sehr starken Chromsäuretauchelement (Fig. 208) zugrunde liegt, bei dem Kohle und Zink in verdünnte Chromsäure tauchen, diese Form hat sich für manche Zwecke als unbrauchbar herausgestellt. Wenn man nämlich den Stromkreis lange Zeit geschlossen läßt, d. h. die metallische Verbindung zwischen beiden Metallenden lange Zeit nicht unterbricht oder, wie man sagt: den Strom nicht „öffnet“, so findet man, daß er nach längerer Zeit nicht mehr so stark ist als anfangs. Das beruht darauf, daß sich an den beiden in der Flüssigkeit befindlichen Metallenden durch elektrolytische Zersetzung gewisse Stoffe, sogenannte „Polarisationsprodukte“, gebildet und angehäuft haben, die nun ihrerseits durch Berührung mit der Flüssigkeit zur Entstehung eines galvanischen Stromes Anlaß geben, der dem ursprünglichen Strome entgegengesetzt ist, ihn also allmählich mehr und mehr schwächt. Um die Entstehung dieses „Polarisationsstromes“ zu verhindern und so den ursprünglichen Strom auf möglichst konstanter Intensität zu erhalten, hat man den Ausweg gefunden, daß man beide Metalle in verschiedene Flüssigkeiten taucht, die durch eine poröse Tonscheidewand voneinander getrennt und so beschaffen sind, daß sie die sich bildenden Polarisationsprodukte im Moment ihrer Entstehung gleich wieder unwirksam machen. So kann sich kein Polarisationsstrom entwickeln, und die elektromotorische Kraft des Elements bleibt konstant. Solche „konstante Elemente“ sind in verschiedenen Formen im Gebrauch. Die bekanntesten und in der Physiologie am meisten benutzten sind die von DANIELL (Fig. 207), bei denen Zink in verdünnte Schwefelsäure und Kupfer in konzentrierte Kupfersulfatlösung taucht, ferner die von BUNSEN, bei denen Zink in verdünnte Schwefelsäure und Kohle (die das Kupfer vertritt) in konzentrierte Salpetersäure taucht, und schließlich die von GROVE, bei denen Zink in verdünnte Schwefelsäure und Platin (statt des Kupfers) in konzentrierte Salpetersäure taucht. Der freie Zinkpol ist bei allen die Kathode.
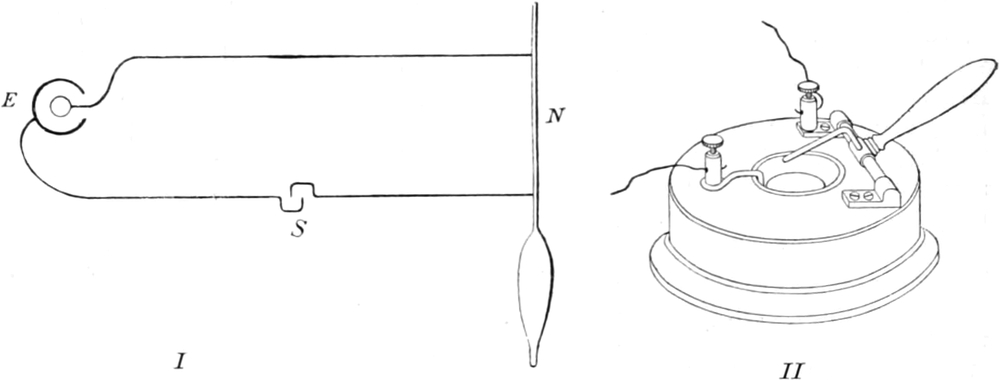
Fig. 209.
I
Stromkreis
, abgeleitet von dem Element
E
zu dem Nerven
N
eines Nervmuskelpräparats. Im Stromkreis befindet sich der Schlüssel
S
.
II
Quecksilberschlüssel
.
In diesen galvanischen Elementen besitzen wir nunmehr Elektrizitätsquellen, von denen wir jeden Augenblick einen galvanischen Strom in bequemster Weise ableiten können, wohin wir ihn haben wollen. Um irgendein lebendiges Objekt, etwa ein Nervmuskelpräparat vom Frosch, galvanisch zu reizen, brauchen wir daher nur den Draht, der die beiden Metalle eines Elements verbindet, zu durchschneiden und zwischen seine Enden das Präparat einzuschalten; dann fließt der Strom durch das Präparat (Fig. 209 I). Um aber bequem jeden Augenblick den Stromkreis unterbrechen und wieder schließen und so die Einwirkung des Reizes auf das Präparat willkürlich beherrschen zu können, schalten wir in den einen Draht noch einen sogenannten „Stromschlüssel“ ein. Dieser besteht aus einem in isolierenden Hartgummi eingelassenen Quecksilbernäpfchen, in welches das eine Drahtende eintaucht, während das andere mit einem kleinen Hebel in metallischer Verbindung steht, den man beliebig jeden Augenblick in das Quecksilber tauchen oder herausheben kann, so daß die metallische Leitung jeden Augenblick hergestellt und wieder unterbrochen oder, mit anderen Worten, der Strom geschlossen und geöffnet werden kann (Fig. 209 II).
Wenn man länger einwirkende Ströme auf ein Präparat anwendet, so darf man nicht die Metalldrähte selbst als Elektroden an den Nerven oder Muskel etc. anlegen, da sonst an der Berührungsstelle des Metalls mit dem Präparat, das ja einen feuchten Leiter vorstellt, wieder Anlaß zur Entstehung von Polarisationsströmen gegeben wäre, die das Präparat selbst reizen und so den Versuch stören würden. Um diesen Uebelstand zu vermeiden, hat man daher sogenannte „unpolarisierbare Elektroden“ konstruiert, die an der Berührungsstelle mit dem Präparat keinen Polarisationsstrom entstehen lassen[447]. Diese unpolarisierbaren Elektroden bestehen in ihrer bequemsten Form je aus einer kurzen Glasröhre, die unten mit einem Pfropfen von plastischem Ton verschlossen ist, in dem ein kurzer, weicher Pinsel steckt, während das Lumen der Röhre mit einer konzentrierten Zinksulfatlösung gefüllt ist, in die ein mit dem Zuleitungsdraht verbundener Zinkstab eintaucht (Fig. 210). Diese Elektroden stecken in verstellbaren Stativen und können ungemein leicht gehandhabt und an das Präparat mit ihren spitzen Pinseln angelegt werden.
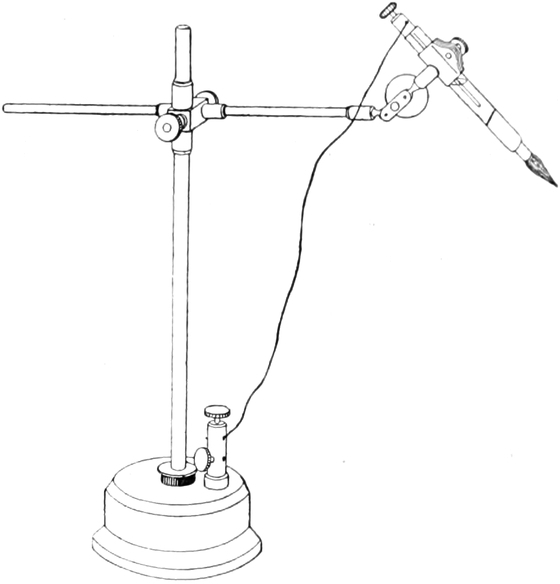
Fig. 210.
Eine unpolarisierbare Elektrode
. In einem beweglichen Stativ steckt eine Glasröhre, die mit einem Tonpfropfen verschlossen und mit konzentrierter Zinksulfatlösung gefüllt ist. In dem Tonpfropfen steckt ein feuchter Pinsel, und in die Lösung ragt ein Zinkstab, zu dem der Draht geleitet wird. Ueber die Pinsel zweier solcher Elektroden wird der Nerv des Präparats gelegt.
Nachdem wir in den galvanischen Elementen eine zuverlässige Quelle der Elektrizität kennen gelernt haben, handelt es sich nunmehr darum, die Intensität des galvanischen Stromes beliebig fein abzustufen. Zu diesem Zwecke müssen wir das Grundgesetz, das die Intensitätsverhältnisse des Stromes formuliert, etwas näher ins Auge fassen. Es ist das OHMsche Gesetz, welches sagt, daß die Intensität eines Stromes proportional ist der elektromotorischen Kraft der Stromquelle und umgekehrt proportional den Widerständen: I = EW .
Die elektromotorische Kraft hängt ab von der Art und der Zahl der Elemente. Manche Elemente haben nur geringe elektromotorische Spannung, andere sehr hohe, und koppelt man zwei oder mehrere Elemente aneinander, so kann man einen Strom von beträchtlicher Stärke erhalten. Nach dem Ohmschen Gesetz wird also das Mittel, um die Intensität I eines Stromes in gröberer Weise zu steigern oder zu schwächen, darin liegen, daß man die Zahl der Elemente vermehrt oder verringert, denn dadurch wird die elektromotorische Kraft E vergrößert oder vermindert. Aber diese Abstufung durch die Veränderung der elektromotorischen Kraft ist eine sehr rohe und läßt keine feineren Intensitätsänderungen zu. Deshalb benutzen wir, wo es sich um feinere Abstufungen der Intensität handelt, den zweiten Faktor, von dem, wie das OHMsche Gesetz sagt, die Intensität abhängig ist: das sind die Widerstände W. Die Widerstände sind von zweierlei Art: einerseits innere Widerstände, d. h. Widerstände, die im Element selbst durch die Flüssigkeit etc. gegeben sind, denn die Flüssigkeit ist ein feuchter und daher schlechter Elektrizitätsleiter; anderseits äußere Widerstände, die in der Art, der Länge und dem Querschnitt der Leitung außerhalb des Elements gelegen sind. Die letzteren sind es hauptsächlich, die wir in feinster Weise abstufen können.
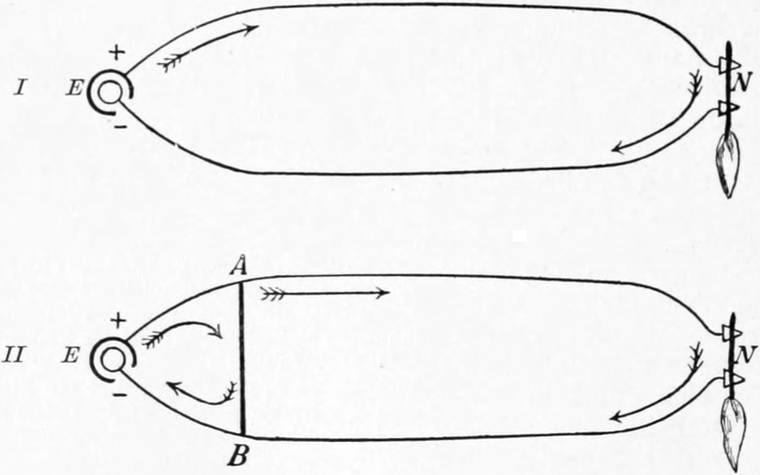
Fig. 211.
Prinzip der Nebenschließung
.
I
Ein einfacher Stromkreis,
II
Stromkreis mit Nebenschließung.
E
Element,
N
Nervmuskelpräparat,
A B
Nebenschließung.
Gute Leiter sind die Metalle; deshalb wählen wir zu unseren Leitungen außerhalb des Elements immer Metalldrähte, am besten Kupferdrähte. Ihr Widerstand ist um so geringer, je kürzer die Leitung und je größer ihr Querschnitt ist. Um den Widerstand zu erhöhen und dadurch die Intensität des Stromes zu schwächen, haben wir also ein sehr feines und leicht abstufbares Mittel in der Hand: wir verlängern die Drahtleitung und nehmen Drähte von recht geringem Querschnitt.
Auf diesen Tatsachen basiert ein Prinzip, das bei den Apparaten, die zur Abstufung der Stromesintensität konstruiert worden sind, allgemein zur Verwendung kommt: das ist das Prinzip der Nebenschließung. Leiten wir z. B. von einem Element E (Fig. 211 I) durch Kupferdrähte einen Kreis ab zu einem Präparat N, so fließt durch das Präparat, wenn es auch als feuchter Leiter einen beträchtlichen Widerstand gibt, doch ein galvanischer Strom von einer bestimmten Intensität, die sich leicht messen läßt. Bringen wir aber in diesem Stromkreise eine „Nebenschließung“ an, indem wir zwei gegenüberliegende Punkte der metallischen Leitung durch einen Querdraht verbinden, so wird dadurch von dem großen Stromkreis noch ein kleiner Kreis (E A B) abgezweigt, in dem die Widerstände bedeutend geringer sind als in dem großen Kreise, weil seine Leitung einerseits nur aus metallischen Leitern besteht und anderseits auch kürzer ist als die des großen Kreises. Die Folge davon ist, wie das Ohmsche Gesetz ohne weiteres lehrt, daß in dem großen Kreise nur noch ein Strom von verschwindend geringer Intensität kreist, der so schwach ist, daß er unter Umständen gar keine Wirkung mehr auf das Präparat ausübt, während in dem kleinen Kreise ein Strom von beträchtlicher Intensität sich bewegt. Wir haben also zwei Extreme der Intensität in dem großen Kreise, in dem sich das Präparat befindet; einmal bei unterbrochener Nebenschließung einen Strom von bemerkenswerter Intensität und das zweite Mal bei geschlossener Nebenschließung einen Strom von ganz verschwindend geringer Intensität. Zwischen diesen beiden Extremen können wir nun die Stromesintensität in der feinsten Weise abstufen, indem wir die Widerstände in der Nebenschließung sukzessive vergrößern, bis sie so groß werden, daß die Nebenschließung fast gar nicht mehr leitet. Dann geht wieder nahezu der ganze Strom durch den großen Kreis und das Präparat.
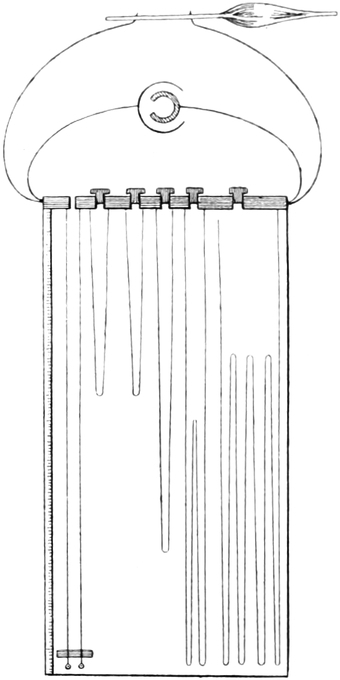
Fig. 212. D
U
B
OIS
-R
EYMOND
s
Rheochord
.
Dieses Prinzip der Nebenschließung hat DU BOIS-REYMOND benutzt zu seinem „Rheochord“, einem Apparat, der dazu dient, die Intensität in dem Stromkreise eines Präparats durch Einschaltung von bestimmt abgemessenen Widerständen in eine Nebenschließung beliebig zu steigern. Als Widerstände sind dabei dünne Drähte von ganz bestimmter Länge benutzt, die nach und nach in die Nebenschließung eingeschaltet werden können. Der Apparat (Fig. 212) besteht nämlich in seinen wesentlichen Teilen aus einer dicken Messingleiste, die in bestimmten Abständen in ihrer Kontinuität unterbrochen ist, so daß sie eigentlich eine Reihe selbständiger Metallklötze vorstellt, die aber alle durch Einfügen metallischer Verbindungsstücke wieder zu einer einzigen Leiste verbunden werden können. Jeder dieser Messingklötze steht ferner mit dem benachbarten Klotz durch einen sehr dünnen Draht von bestimmter Länge in Verbindung, und auf dem Draht, der die ersten beiden Metallklötze verbindet, kann ein metallischer Schieber hin und her geschoben werden, so daß die leitende Drahtstrecke, welche die beiden ersten Messingklötze verbindet, durch Hinaufschieben des Schiebers verkürzt oder ganz ausgeschaltet werden kann. Dieser ganze Apparat wird als Nebenschließung in den Stromkreis eingeschaltet, in dem sich das Präparat befindet, in der Weise, daß von der Stromquelle die beiden Poldrähte zu der Messingleiste und von dort zwei andere Drähte zum Präparat geleitet werden. Sind nun die Verbindungsstücke der Metallklötze sämtlich zwischen die Klötze eingefügt, so daß die Messingleiste eine Kontinuität bildet, so haben wir denselben Fall wie in Fig. 212. Es geht also durch den kleinen Kreis ein starker Strom, weil hier wenig Widerstände sind, während durch den großen Kreis nur ein sehr schwacher Strom fließt, da hier das Präparat einen beträchtlichen Widerstand bietet. Wir können nun aber mittels unseres Apparats in bequemster Weise den geringen Strom, der durch den Präparatkreis geht, verstärken, indem wir die Widerstände in dem Kreise der Nebenschließung erhöhen, und das erreichen wir, indem wir den Schieber zunächst immer weiter und weiter hinabschieben (Fig. 212), so daß der Strom eine immer größere Strecke des ersten Rheochorddrahtes durchlaufen muß, die an einer Skala zu messen ist. Dann aber können wir die Widerstände noch mehr verstärken, indem wir nach und nach auch noch die Verbindungsstücke zwischen den Metallklötzen herausnehmen. Die Folge davon ist, daß der Strom ausschließlich in der Nebenschließung die ganzen Rheochorddrähte durchlaufen muß, die bei ihrer Dünne und Länge einen ganz beträchtlichen Widerstand bilden. Je mehr aber die Widerstände im Kreise der Nebenschließung wachsen, um so mehr steigt die Intensität des Stromes, der durch den Präparatkreis geht, und da die Widerstände genau abgemessen sind, so kann man auf diese Weise die Stromintensität im Präparatkreise in der feinsten Weise abstufen. Aehnliche Widerstandsapparate, die zum Teil auf dem gleichen, zum Teil auf ganz anderen Prinzipien beruhen, sind in größerer Zahl und in mannigfaltigen Formen für physikalische wie für physiologische Zwecke konstruiert worden. Es genügt indessen für physiologische Zwecke in den meisten Fällen das alte DU BOIS-REYMONDsche Rheochord.
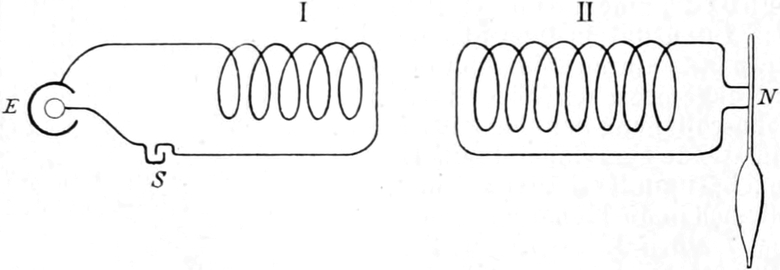
Fig. 213.
Induktionsstrom
.
I
Primäre Spirale,
E
Element,
S
Schlüssel.
II
Sekundäre Spirale,
N
Präparat.
Schließlich bleibt noch übrig, Mittel kennen zu lernen, die es ermöglichen, einen Strom von momentaner Dauer auf ein Präparat einwirken zu lassen, und die es ferner gestatten, solche Ströme von momentaner Dauer in schneller, rhythmischer Aufeinanderfolge zu erzeugen. Solche Mittel geben uns die Tatsachen der Induktion an die Hand. Es ist dazu nötig, daß wir uns die Gesetze der Induktionsströme kurz vergegenwärtigen. Haben wir eine Drahtspirale, in deren Nähe, aber ohne sie zu berühren, sich eine zweite Drahtspirale befindet, und lassen wir durch die erste, die sogenannte „primäre Spirale“, einen konstanten Strom fließen (Fig. 213), so entsteht im Moment der Schließung dieses primären Stromes in der zweiten, der „sekundären Spirale“, ebenfalls ein Strom. Dieser „Induktionsstrom“ ist von ganz kurzer Dauer; er entsteht nur im Moment der Schließung des primären Stromes, um sofort wieder zu verschwinden. Solange der primäre Strom durch die primäre Spirale fließt, ist nicht der geringste Strom mehr in der sekundären Spirale vorhanden. Dagegen entsteht sofort wieder ein kurzer Induktionsstrom in der sekundären Spirale, sobald der primäre Strom geöffnet wird. Also nur im Moment der Schließung und der Oeffnung des primären Stromes entsteht ein Induktionsstrom. Der „Schließungs-Induktionsstrom“ ist aber in gewisser Beziehung ganz wesentlich von dem „Oeffnungs-Induktionsstrom“ unterschieden. Während der Schließungs-Induktionsstrom die entgegengesetzte Richtung hat wie der primäre Strom, ist der Oeffnungs-Induktionsstrom dem primären Strome gleich gerichtet. Diese Tatsache ist wichtig, denn sie erklärt uns gleichzeitig einen anderen Unterschied zwischen dem Schließungs- und Oeffnungsschlag. Wird nämlich der Strom in der primären Spirale geschlossen, so induziert er bei seinem Entstehen nicht nur in der sekundären Spirale, sondern auch in den Windungen der eigenen Spirale einen entgegengesetzt gerichteten Strom, und dieser ihm entgegenlaufende „Extrastrom“ hemmt das Anschwellen des primären Stromes, bis letzterer die Höhe seiner Intensität erreicht hat, auf der die Induktionswirkung aufhört. Das ist bei der Oeffnung des primären Stromes aber anders, denn der Extrastrom, der bei der Oeffnung des primären Stromes in den Windungen der primären Spirale entsteht, ist diesem gleich gerichtet. Daher macht sich auch in der sekundären Spirale ein wesentlicher Unterschied zwischen dem Induktionsschließungsschlag und dem Induktionsöffnungsschlag bemerkbar, insofern beim Schließungsschlag die elektrische Spannung wegen des langsameren Anschwellens des primären Stromes sich allmählicher ausgleicht als beim Oeffnungsschlag, wo der Ausgleich ganz plötzlich erfolgt. Wo es sich daher darum handelt, einen ganz momentanen Strom auf ein lebendiges Objekt einwirken zu lassen, da werden wir ausschließlich den Induktionsöffnungsschlag verwenden. Abstufen läßt sich die Intensität der Induktionsschläge durch die Abstände, die man zwischen primärer und sekundärer Spirale läßt. Bei größerem Abstand ist die Intensität geringer, bei kleinerem größer, am größten aber, wenn man die sekundäre Drahtrolle, die man immer etwas größer wählt, über die primäre ganz hinüberschiebt.
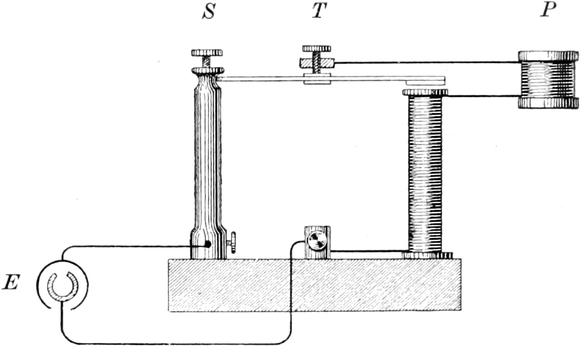
Fig. 214.
N
EEF
scher oder W
AGNER
scher Hammer
.
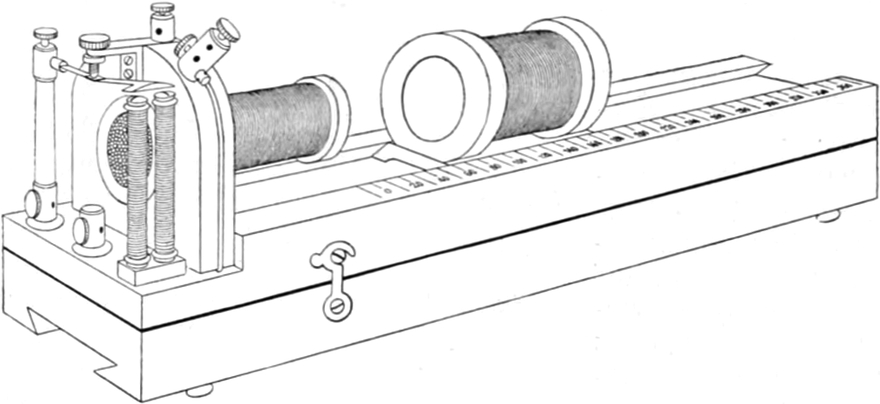
Fig. 215.
D
U
B
OIS
-R
EYMOND
s Schlitten-Induktorium
.
Ein derartiger Apparat zur Erregung von Induktionsströmen ist das zum allernotwendigsten Handwerkszeug des Physiologen gehörige „Schlitten-Induktorium“ von DU BOIS-REYMOND. Dieser Apparat, der die sekundäre Drahtrolle auf einer schlittenartigen Bahn verschieben läßt (Fig. 215), ist gleichzeitig dazu eingerichtet, einzelne Induktionsschläge schnell und rhythmisch hintereinander zu erzeugen. Die Vorrichtung, die das ermöglicht, ist der NEEFsche oder WAGNERsche Hammer (Fig. 214) und beruht auf folgendem Prinzip. Bekanntlich hat der galvanische Strom die Eigentümlichkeit, ein Stück weichen Eisens, das er umfließt, in einen Magneten zu verwandeln, solange er geschlossen bleibt. Wird der Strom geöffnet, so verschwindet der Magnetismus auch wieder aus dem weichen Eisen. Beim NEEFschen Hammer haben wir nun eine Messingsäule S, die eine gerade gestreckte Feder trägt. Diese Feder, an deren freiem Ende ein kleiner Hammer aus weichem Eisen befestigt ist, berührt in ihrer Ruhelage eine Stellschraube T, welche mit einem Draht P in Verbindung steht, der in Windungen um einen senkrecht unter dem Federhammer befindlichen Stab aus weichem Eisen herumläuft und in einer zweiten kleinen Messingsäule endigt. Die beiden Messingsäulen tragen Klemmschrauben, um die zuleitenden Drähte vom Elemente E her zu befestigen. Wird der galvanische Strom des Elements geschlossen, so geschieht folgendes. Der Strom tritt durch die Messingsäule S ein, geht durch die Feder, von hier aus in die Schraube T, dann weiter durch die Drahtrolle P, von hier um den Eisenstab herum und zur zweiten, kleineren Messingsäule, von wo er zum Element zurückkehrt. Die Folge davon ist, daß der weiche Eisenstab magnetisch wird und den über ihm schwebenden Hammer anzieht. Dadurch wird der Kontakt der Feder mit der Schraube T aufgehoben. Durch die Aufhebung dieses Kontakts aber ist der Strom unterbrochen; folglich hört der Magnetismus in dem weichen Eisenstab auch wieder auf, und der Hammer schnellt vermöge der Federkraft der Feder wieder in die Höhe. Infolgedessen berührt die Feder wieder die Schraube T, und der Strom ist von neuem geschlossen. So wird durch diese sinnreiche Einrichtung, solange das Element eingeschaltet bleibt, der Strom fortwährend geschlossen und unterbrochen in schneller, rhythmischer Aufeinanderfolge. Beim DU BOIS-REYMONDschen Schlittenapparat (Fig. 215) ist ein derartiger Hammer in den primären Stromkreis eingeschaltet, und indem der Hammer spielt, bekommen wir bei jeder Oeffnung und jeder Schließung im sekundären Kreise einen Induktionsschlag, so daß eine schnelle Aufeinanderfolge von Induktionsschlägen entsteht, die es gestattet, ein Präparat in schnellem Rhythmus intermittierend zu reizen. Es ist zwar nicht zu übersehen, daß mittels dieses Apparates keine rhythmischen Reize von wirklich vollkommen gleicher Intensität und gleicher Frequenz zu erzielen sind, aber die Konstruktion einfacher Apparate, die diese Anforderungen tatsächlich erfüllen und die gleichzeitig eine beliebige Abstufung sowohl der Intensität als der Frequenz der Einzelreize gestatten, stößt vorläufig auf unüberwindliche Schwierigkeiten, so sehr ein solcher Apparat den sehnlichen Wunsch des Physiologen bildet.
Wir verdanken die Konstruktion der meisten oben abgebildeten Apparate allein DU BOIS-REYMONDs Erfindergabe, die uns eine Methodik geschaffen hat, die in vielen Gebieten der Physiologie unentbehrlich geworden ist.
Gehen wir nach diesem Exkurs über die Technik der galvanischen Reizung zu den Wirkungen über, die der galvanische Reiz auf die lebendige Substanz ausübt.
a) Erregungswirkungen.
Es ist eine bemerkenswerte Tatsache, daß die elektrische Reizung, obwohl sie in der Physiologie seit langer Zeit zu den gewöhnlichsten und alltäglichsten Handhabungen gehört, früher fast ausschließlich auf die Nerven- und Muskelfaser und nur gelegentlich auch auf Pflanzenzellen und einzellige Organismen angewendet worden ist. Dieser Umstand hängt eng mit der einseitigen Entwicklung unserer Wissenschaft als einer reinen Organphysiologie der Wirbeltiere zusammen. Wenn man sich auf die Organe des hochentwickelten Tierkörpers beschränkt, dann ist es bei der Abhängigkeit fast aller Gewebe vom Nervensystem bei diesen Objekten sehr naheliegend und in vielen Fällen sogar unvermeidlich, die verschiedenen Gewebe nur indirekt durch die dazugehörigen Nerven zu reizen, da man die Beteiligung der zwischen allen Gewebezellen ungemein verzweigten Nervenfasern bei der Reizung meistens kaum ausschalten kann. Nur für den Muskel haben wir im Curare, jenem äußerst merkwürdigen Pfeilgift der südamerikanischen Indianer, ein Mittel kennen gelernt, um ihn der Einwirkung des Nervensystems vollständig zu entziehen. Die Zellen der Drüsengewebe, der Schleimhäute, der Bindegewebe etc. dagegen sind von dem Einfluß der sie versorgenden Nerven nicht zu befreien, und wenn wir daher einen elektrischen Strom auf sie einwirken lassen, so bekommen wir bei der viel höheren Erregbarkeit der Nervenfasern nie eine direkte Reizung der betreffenden Gewebezellen allein, sondern immer zugleich eine Reizung der Nervenfasern, die nun ihrerseits wieder ihre eigene Erregung auf die Drüsenzelle, Bindegewebezelle etc. übertragen. Um ein Gewebe durch Reizung in Tätigkeit zu versetzen, genügt es freilich und ist es nicht nur sehr bequem, sondern sogar auch den natürlichen Verhältnissen am meisten entsprechend, dasselbe indirekt durch den Nerven zu reizen; die Wirkungen des galvanischen Stromes auf das Gewebe selbst aber lassen sich dabei nicht studieren. So kommt es, daß es sich bei allen unzähligen elektrischen Reizversuchen am Wirbeltierkörper fast immer nur um direkte Nerven- oder Muskelreizung gehandelt hat.
Dieser Umstand hat in der Physiologie zu mancherlei einseitigen Vorstellungen über die Wirkungen der galvanischen Reizung geführt. Das ist besonders hervorgetreten bei der Formulierung der Gesetzmäßigkeiten in den polaren Wirkungen des konstanten Stromes auf die lebendige Substanz. Läßt man einen konstanten Strom durch ein lebendiges Objekt fließen, so zeigt sich, daß nicht die ganze vom Strom durchflossene Strecke gleichzeitig erregt wird, sondern daß die Erregung an der Eintritts- resp. Austrittsstelle des Stromes, also an der Anode resp. Kathode primär entsteht und von hier erst sich über das ganze Objekt ausbreitet. Anode und Kathode sind also die Stellen, an denen der Strom überhaupt allein direkt erregend wirkt, aber wann Anode und wann Kathode Ausgangspunkt der Erregung ist, das ist einer ganz bestimmten Gesetzmäßigkeit unterworfen, und diese Gesetzmäßigkeit findet ihren Ausdruck in dem Gesetz der polaren Erregung.
Wenn man durch einen motorischen Nerven einen konstanten Strom schickt, so wird der Nerv bei der Schließung an der Kathode erregt, und von hier aus pflanzt sich die Erregung durch Nervenleitung bis zum Muskel fort, der dann eine Zuckung ausführt. Bei der Oeffnung des Stromes dagegen findet die Erregung des Nerven an der Anode statt und pflanzt sich von hier aus zum Muskel fort, daß er zuckt. Dieses Gesetz der polaren Erregung des Nerven hat PFLÜGER[448] bereits im Jahre 1859 begründet. Man überzeugt sich von seiner Richtigkeit auf verschiedene Weise, am besten durch folgenden Versuch. Man läßt einen konstanten Strom in verschiedener Richtung durch den Nerven eines Nerv-Muskelpräparats fließen, einmal in absteigender Richtung, d. h. so, daß die Anode dem zentralen Ende und die Kathode dem Muskel näher liegt, und das andere Mal in aufsteigender Richtung, d. h. umgekehrt, so daß die Anode dem Muskel und die Kathode dem zentralen Ende des Nerven am nächsten liegt, und läßt beide Male die Zuckung des Muskels auf einer Myographiontafel[449] aufzeichnen. Dann findet man aus der Länge des Stadiums der latenten Reizung, daß bei der Schließung des absteigenden Stromes der Muskel früher zuckt als bei der Schließung des aufsteigenden Stromes, daß dagegen bei der Oeffnung das umgekehrte Verhältnis stattfindet, und zwar beträgt die Differenz in der Zeit gerade so viel als die Dauer der Erregungsleitung in der intrapolaren Nervenstrecke. Daraus geht hervor, daß die Erregung bei der Schließung von der Kathode, bei der Oeffnung von der Anode ausgehen muß. Dieses selbe Gesetz der polaren Erregung wurde alsbald auch von BEZOLD[450] für den quergestreiften Muskel als gültig erkannt, und ENGELMANN[451] zeigte, daß es auch auf den glatten Muskel Anwendung findet. Nachdem dann spätere Untersuchungen, besonders von BIEDERMANN[452], noch eine Anzahl neuer Beweise für die Gültigkeit dieses Gesetzes geliefert hatten, nahm man stillschweigend an, daß ebenso wie der Nerv und der Muskel überhaupt alle lebendige Substanz durch den galvanischen Strom bei der Schließung an der Kathode und bei der Oeffnung an der Anode erregt würde. Allein, hier zeigte sich, wie die einseitige Untersuchung des Nerven und Muskels zu Irrtümern zu führen geeignet ist, die bei einer vergleichend-physiologischen Untersuchung vermieden werden können, denn die Prüfung anderer Formen der lebendigen Substanz, und zwar der verschiedenartigsten freilebenden Zellen, ergab, daß überhaupt nicht ein allgemein gültiges Gesetz der polaren Erregung für die lebendige Substanz besteht.
Fig. 216.
Objektträger mit Kästchen für galvanische Reizung mikroskopischer Objekte
.
a
und
a
′
, Leisten von gebranntem Ton,
b
und
b
′
isolierende Kittwälle, welche mit den Leisten zusammen ein Kästchen abgrenzen, in das die Objekte gebracht werden.
Schon im Jahre 1864 machte KÜHNE[453] die eigentümliche Beobachtung, daß das Actinosphaerium Eichhornii (Fig. 217) einem ganz abweichenden Erregungsgesetze gehorche. Allein, die Beobachtung KÜHNEs blieb mehr als zwei Jahrzehnte lang vereinzelt und unbeachtet, weil man einerseits in dem vollkommen unbegründeten Vorurteil befangen war, daß das Gesetz der polaren Erregung des Muskels und Nerven allgemein für alle lebendige Substanz gelten müsse und weil man andererseits in der Physiologie in einer so weitgehenden Unkenntnis der wirbellosen Tiere lebte, daß man sich mit der Deutung der an diesen beobachteten Vorgänge gar nicht zu befassen wagte. Erst als man gewisse andere Wirkungen des galvanischen Stromes, die „Galvanotaxis“, entdeckte, wurde die KÜHNEsche Beobachtung wieder beachtet und mit vollkommneren Methoden bestätigt. Daran schloß sich die Beobachtung einer langen Reihe von freilebenden Zellformen, die sämtlich ein vom Nerven und Muskel in verschiedener Weise abweichendes Gesetz der polaren Erregung befolgen[454].
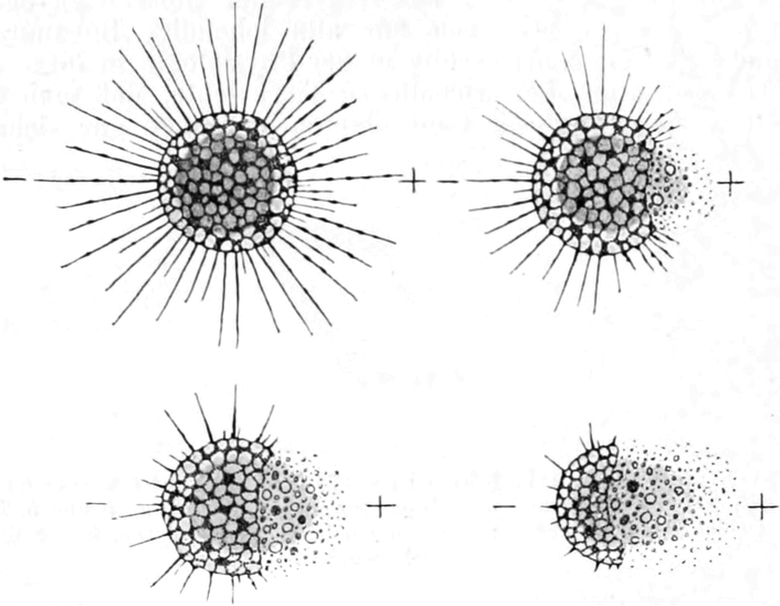
Fig. 217.
Actinosphaerium Eichhornii
in vier aufeinanderfolgenden Stadien der polaren Erregung durch den konstanten Strom. Von der Anode her zerfällt das Protoplasma.
Um unter dem Mikroskop auf dem Objektträger galvanische Reizversuche mit unpolarisierbaren Elektroden vorzunehmen, bedienen wir uns am zweckmäßigsten eines Objektträgers (Fig. 216), auf dem zwei Leisten von porösem Ton, wie er in den Tonzellen der galvanischen Elemente Verwendung findet, parallel nebeneinander (a und a′) aufgekittet und an ihren Enden durch je einen kleinen Wall isolierenden Kittes (Kolophonium und Wachs) verbunden sind (b und b′), so daß ein kleines offenes Kästchen auf dem Objektträger entsteht, in das man die Wassertropfen mit den zu untersuchenden Objekten hineinbringen kann. An die beiden parallelen Tonleisten werden die Pinsel der gewöhnlichen unpolarisierbaren Elektroden angelegt. Mittels dieser kleinen Vorrichtung gelingt es, die mikroskopischen Objekte nahezu parallel zu durchströmen und die Wirkungen der Reizung gleichzeitig unter dem Mikroskop zu beobachten. Reizt man auf diese Weise das Actinosphaerium, wenn es seine Pseudopodien wie Sonnenstrahlen geradlinig aus dem kugelförmigen Körper herausgestreckt hat, durch einen konstanten Strom, so findet man, daß im Moment der Schließung an denjenigen Pseudopodien, die in der Richtung der Anode und der Kathode ausgestreckt sind, sich Kontraktionsvorgänge bemerkbar machen, indem das Protoplasma der Pseudopodien sich zu kleinen Kügelchen und Spindelchen zusammenballt und dem Körper zuströmt (Fig. 216). Diejenigen Pseudopodien, die senkrecht zur Stromesrichtung ausgestreckt sind, bleiben dagegen in Ruhe. Wir haben also im Moment der Schließung eine kontraktorische Anoden- und Kathodenerregung. Die Erregung an der Anode ist von beiden die stärkere. Während der Dauer des konstanten Stromes macht sich das auch bemerkbar. Die Erregungssymptome an der Kathode verschwinden nämlich sehr bald nach der Schließung allmählich, und die Pseudopodien nehmen hier ihr glattes Aussehen wieder an, während an der Anodenseite die Erregung fortdauert, solange der Strom geschlossen bleibt. Das äußert sich in den immer weiter fortschreitenden Kontraktionsvorgängen. Das Protoplasma zieht sich immer mehr von der Anodenseite her nach dem Körper zurück; bald sind die Pseudopodien ganz eingezogen. Jetzt macht sich die Kontraktion am Körper selbst bemerkbar: das Protoplasma der Vakuolenwände fließt mehr und mehr nach dem Innern hinein, dabei zerplatzen die Vakuolen, und ihre Wand selbst zerfällt zum Teil in feine Körnchen. Dieser Einschmelzungs- und Zerfallsprozeß dauert so lange fort, wie der Strom hindurchfließt, nimmt aber allmählich etwas an Intensität ab. Es kann also kein Zweifel bestehen, daß der konstante Strom auch während seiner Dauer Erregung erzeugt. In dem Moment, wo der Strom geöffnet wird, hört dagegen auch der Einschmelzungsprozeß des Protoplasmas an der Anode sofort auf. Statt dessen machen sich an der Kathode geringe Erregungssymptome bemerkbar, indem die Pseudopodien hier wieder Kontraktionsvorgänge zeigen und ihr Protoplasma zu Kugeln und Spindeln zusammenfließen lassen. Diese Wirkung hört aber nach einiger Zeit allmählich wieder auf, und es kommt meist nicht zu einer vollständigen Einziehung der kathodischen Pseudopodien. Oeffnet man den Strom nicht, so zerfällt der Körper des Actinosphaerium von der Anode her immer weiter, aber im Laufe der Zeit immer langsamer, bis der Zerfall schließlich, wenn der Strom nur schwach war, ganz stehen bleibt. War der Strom dagegen stärker, so schreitet der Zerfallsprozeß schnell fort, bis der ganze Körper in einen leblosen Körnerhaufen zerfallen ist. Das Actinosphaerium wird also bei der Schließung des konstanten Stromes an der Anode und an der Kathode, bei der Oeffnung nur an der Kathode kontraktorisch erregt.
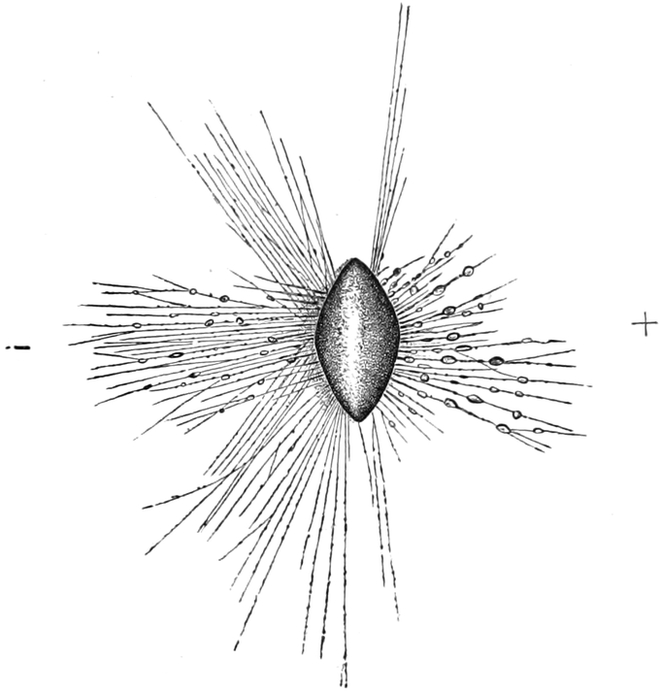
Fig. 218.
Amphistegina Lessonii
(vergl.
Fig. 185
p. 441). Die linsenförmige Kalkschale steht auf der scharfen Kante und entsendet aus der zum Boden gerichteten Schalenöffnung nach allen Seiten hin fadenförmige Pseudopodien, die am anodischen Pol sehr starke, am kathodischen Pol etwas schwächere kontraktorische Erregung deutlich erkennen lassen.
Ganz ebenso wie Actinosphaerium werden auch viele marine Rhizopoden, wie Orbitolites, Amphistegina (Fig. 218) u. a., bei der Schließung des Stromes an der Anode stark, an der Kathode schwach kontraktorisch erregt, eine Tatsache, die auf den langen fadenförmigen Pseudopodien noch viel deutlicher in ihrer Reinheit hervortritt als bei Actinosphaerium, indem sich auf den Pseudopodienfäden die für jede starke kontraktorische Erregung so überaus charakteristischen Kügelchen und Spindelchen an beiden Polen ganz besonders schön entwickeln[455].
An Flimmerepithelien von Wirbeltieren sah KRAFT[456] gleichfalls, daß beim Hindurchfließen des konstanten Stromes die Flimmerbewegung im Moment der Schließung an beiden Polen beschleunigt wurde. Ueber die polare Wirkung der Oeffnung konnte er nicht zu einem definitiven Ergebnis gelangen. Schließlich hat LOEB[457] gefunden, daß auch bei Amblystoma, einer amerikanischen Schwanzlurchform, die Hautdrüsenzellen bei der Schließung des Stromes an der Anode erregt werden, so daß am anodischen Pol die Ausscheidung eines weißlichen Sekrets stattfindet, gleichgültig in welcher Richtung der Strom durch den Körper geschickt wird.
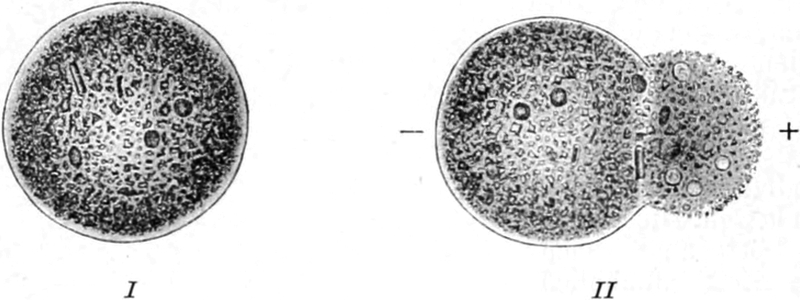
Fig. 219.
Pelomyxa palustris
.
I
Normal, kuglig kontrahiert.
II
Im Moment der Schließung beginnt an der Anode das Protoplasma zu zerfallen.
Etwas anders, aber auch vom Muskel abweichend, verhält sich Pelomyxa[458]. Wenn man dieses Protoplasmaklümpchen mit einem konstanten galvanischen Strom reizt, so tritt im Moment der Schließung nur an der Anode eine Erregung ein, die sich in einer plötzlichen, ruckartigen Kontraktion mit sofort darauffolgendem Zerfall der Anodenseite äußert (Fig. 219). Bei der Oeffnung des Stromes erfolgt eine gleiche Kontraktion an der Kathodenseite, während der Zerfall an der Anode sofort sistiert wird. Läßt man dagegen den Strom länger geschlossen, so zerfällt schließlich der Körper von der Anodenseite her allmählich in eine tote Masse. Also Pelomyxa zeigt ebenfalls, daß auch die Dauer des konstanten Stromes als Reiz wirkt. Dabei wird, je länger der Strom geschlossen bleibt, die Erregbarkeit immer geringer. Wird nach einiger Zeit der Einwirkung der Strom geöffnet, so wirkt häufig die Oeffnung gar nicht mehr erregend, und um bei der Schließung einen neuen Erfolg zu bekommen, muß man jetzt bedeutend stärkere Ströme anwenden als zuvor. Die Abnahme der Erregbarkeit bei längerer Einwirkung des Stromes ist auch der Grund, weshalb am Actinosphaerium bei gleichbleibender Intensität des durchfließenden Stromes der Einschmelzungsprozeß immer mehr an Intensität abnimmt. Die lebendige Substanz verliert eben bei längerer Einwirkung eines Reizes an Erregbarkeit. Das Erregungsgesetz der Pelomyxa ist also folgendes: Pelomyxa wird bei der Schließung an der Anode und bei der Oeffnung an der Kathode kontraktorisch erregt.
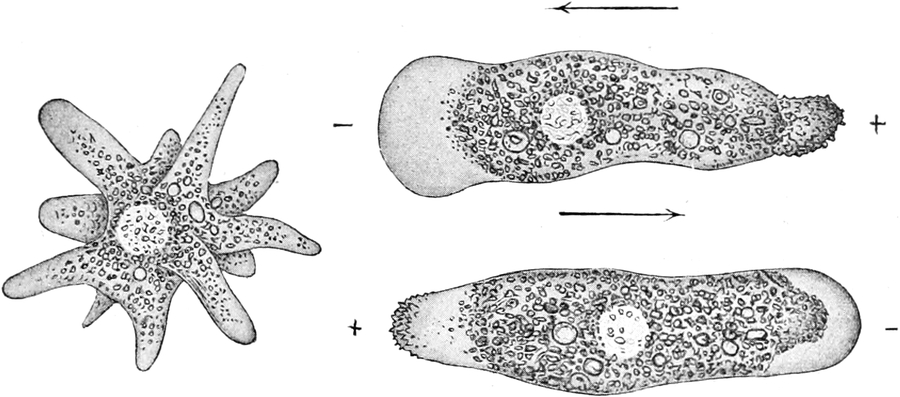
Fig. 220.
Amoeba proteus
. Links ungereiztes Individuum mit zahlreichen Pseudopodien, rechts zwei Individuen durch den galvanischen Strom gereizt. An der Anode zeigt sich eine typische Kontraktion, an der Kathode eine starke Expansion des Protoplasmas, was besonders deutlich bei plötzlicher Wendung der Stromrichtung bemerkbar wird.
Wieder eine andere Form der polaren Erregung, die aber vielleicht noch interessanter ist, zeigt uns die Amoeba proteus[459]. Schickt man durch den Amöbenkörper, wenn er nach verschiedenen Richtungen hin seine Pseudopodien ausstreckt, einen konstanten Strom, so sieht man, daß er alsbald die typische Form der Amoeba limax annimmt, d. h. die langgestreckte Form, bei der das Protoplasma in einer einzigen Richtung fließt, so daß der ganze Körper gewissermaßen ein einziges dickes, großes Pseudopodium bildet. Dabei zeigt sich, daß der langgestreckte Körper an der Anode kontraktorisch erregt ist, denn hier entwickeln sich die charakteristischen BÜTSCHLIschen Vakuolen im Protoplasma, und das letztere zieht sich stark von der Anodenseite zurück, während an der Kathode im Gegenteil eine Expansion erfolgt, denn hier breitet sich das Protoplasma zu einem breiten Lappen aus, der Kathode entgegen. Man sieht diese Vorgänge am besten, wenn man plötzlich die Richtung des Stromes wendet, so daß nunmehr Kathode wird, was vorher Anode war, und umgekehrt (Fig. 220).
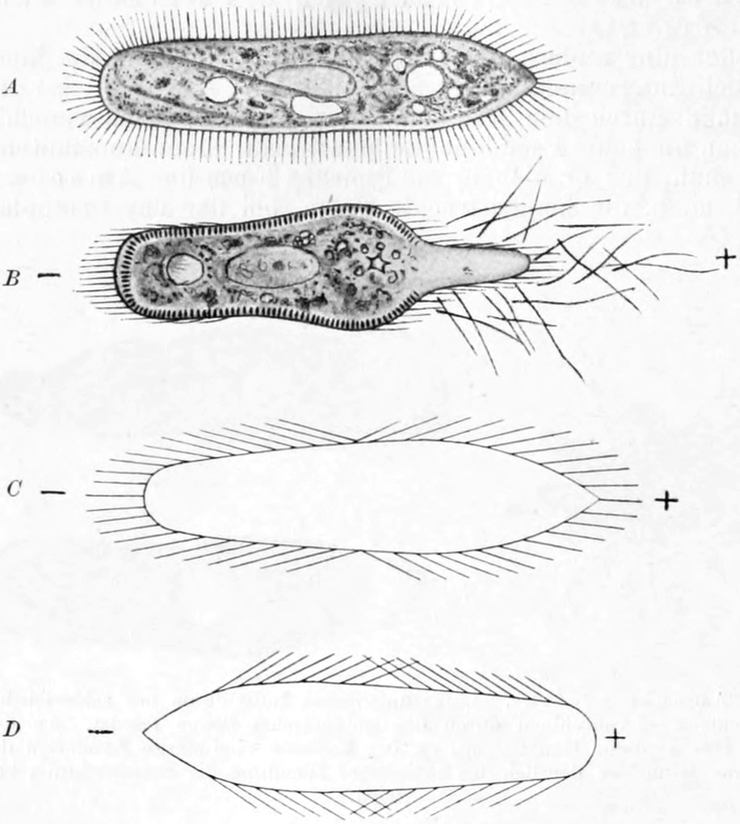
Fig. 221.
Paramaecium aurelia, polare Erregungsvorgänge
.
A
Ungereiztes Individuum.
B
Wirkung eines starken Stromes: das anodische Ende hat sich zipfelförmig zusammengeschnürt und seinen Trichocysteninhalt ausgestoßen.
C
Schwinglage der Wimpern (es ist nur der Körperumriß gezeichnet): an der Anode sind die Wimpern stärker nach dem spitzen hinteren Körperpol gebogen, an der Kathode mehr nach dem stumpfen Vorderende.
D
Dasselbe bei umgekehrter Körperlage. Nach L
UDLOFF
.
Ganz analoge Erregungsverhältnisse hat LUDLOFF[460] an Paramaecium nachgewiesen. Bei der Schließung des Stromes kommen auch hier zunächst schon in der äußeren Körperform an der Anode Kontraktionsvorgänge zum Ausdruck, indem das anodische Körperende bei starken Strömen sich zipfelförmig zusammenschnürt und seinen Trichocysten-Inhalt auspreßt, so daß die Trichocystenfäden das betreffende Körperende umgeben (Fig. 221 B). Viel charakteristischer aber äußert sich die polare Wirkung des Stromes an der Wimperbewegung. Es werden nämlich die Wimpern an beiden Körperpolen in entgegengesetztem Sinne erregt, und zwar werden die anodischen Wimpern kontraktorisch erregt, indem sie stärker nach dem Hinterende des Körpers schlagen, die kathodischen Wimpern dagegen zeigen ein Ueberwiegen der expansorischen Bewegungsphase, indem sie stärker nach dem Vorderende des Körpers hin schwingen, gleichgültig in welcher Lage zur Stromrichtung der Körper fixiert sein mag (Fig. 221 C u. D). Wir sehen also, daß bei der Amöbe sowohl wie beim Paramaecium die Schließung des Stromes an beiden Polen entgegengesetzte Wirkungen erzeugt, und zwar an der Anode eine kontraktorische Erregung, an der Kathode ein stärkeres Hervortreten der Expansionsphase.
Die polaren Wirkungen des galvanischen Stromes sind aber auch beim Muskel, wie uns besonders die Untersuchungen von BIEDERMANN[461] an glatten und quergestreiften Muskeln gezeigt haben, in Wirklichkeit noch komplizierter, als es das Erregungsgesetz des Muskels in der Form, wie es früher ausgesprochen wurde, angibt. Wir müssen auch hier die Wirkungen noch weiter spezialisieren und nicht nur die kontraktorische Erregung, sondern auch die expansorischen Wirkungen berücksichtigen. Aus den Untersuchungen von BIEDERMANN geht hervor, daß der konstante Strom am Muskel bei der Schließung nicht nur eine kontraktorische Erregung an der Kathode, sondern gleichzeitig eine expansorische Wirkung an der Anode erzeugt. Am Muskel, der sich auf der Höhe seiner Ausstreckung befindet, kann die expansorische Wirkung an der Anode begreiflicherweise nicht zum Ausdruck kommen, denn der vollständig ausgestreckte Muskel kann nicht noch zu einer weiteren Ausstreckung gebracht werden. Daß aber die Anode bei der Schließung expansorisch erregend wirkt, wird sofort sichtbar, wenn man die Reizung an glatten oder quergestreiften Muskeln ausführt, die sich im Kontraktionszustande befinden. Im Moment der Schließung erfolgt alsdann unmittelbar an der Anode sofort eine lokale Erschlaffung. Ebenso konnte BIEDERMANN am Herzmuskel feststellen, daß umgekehrt bei der Oeffnung außer der kontraktorischen Erregung an der Anode auch noch eine expansorische Wirkung an der Kathode sich einstellt. Demnach ergibt sich die interessante Tatsache, daß die Wirkungen bei der Oeffnung an beiden Polen die entgegengesetzten sind wie bei der Schließung. Die Erfahrungen am Nerven liefern dazu ein vollständiges Analogon. Am Nerven haben wir nämlich auch zwei entgegengesetzte Wirkungen an beiden Polen. Das kommt in der Veränderung der Erregbarkeit zum Ausdruck, die an den Polen eintritt, wenn der Nerv von einem galvanischen Strom durchflossen wird. Der Zustand, in dem sich ein Nerv oder Muskel befindet, solange er von einem konstanten galvanischen Strome durchflossen wird, ist von DU BOIS-REYMOND als „Elektrotonus“ bezeichnet worden. Reizversuche an solchen Nerven, die sich in diesem „elektrotonischen“ Zustande befinden, haben nämlich gezeigt, daß nach der Schließung des Stromes die Erregbarkeit an der Kathode gegen die Norm erhöht, an der Anode dagegen herabgesetzt ist, und daß sich dieses Verhältnis bei der Oeffnung des Stromes vollkommen umkehrt, so daß noch kurze Zeit nach der Oeffnung eine Erregbarkeitssteigerung an der Anode und eine Erregbarkeitsherabsetzung an der Kathode bemerkbar ist. Wir haben also an der Kathode und Anode bei der Schließung entgegengesetzte Prozesse, die sich bei der Oeffnung an beiden Polen in ihr Gegenteil umkehren. Ob sich auch bei manchen freilebenden Zellen ähnliche Verhältnisse zwischen den Wirkungen von Schließung und Oeffnung einerseits und denen der beiden Pole anderseits werden auffinden lassen, müssen spätere Versuche zeigen. Daß aber dieser Gegensatz, wie er beim Muskel und Nerven besteht, nicht für alle lebendige Substanz verallgemeinert werden darf, zeigt einfach die Tatsache, daß z. B. beim Actinosphaerium, bei Orbitolites, bei Amphistegina ein Gegensatz in den Wirkungen beider Pole bei der Schließung gar nicht vorhanden ist, daß vielmehr hier sowohl an der Anode als an der Kathode eine kontraktorische Erregung entsteht.
Fassen wir das Ergebnis unserer Erfahrungen über die polaren Wirkungen des galvanischen Stromes kurz zusammen, so können wir nur sagen, daß die primären Wirkungen des konstanten Stromes an der Eintrittsstelle (Anode) und an der Austrittsstelle (Kathode) der lebendigen Substanz lokalisiert sind, daß aber die Art der Wirkungen bei den verschiedenen Formen der lebendigen Substanz an der Kathode und an der Anode bei der Schließung und bei der Oeffnung sehr verschieden ist, und daß sich demnach kein allgemein gültiges Gesetz der polaren Erregung für alle lebendige Substanz aufstellen läßt.
Verlassen wir aber nunmehr die Betrachtung der polaren Wirkungen des galvanischen Stromes, und fassen wir zum Schluß noch die verschiedenen Arten von Erregungswirkungen ins Auge, welche die elektrische Reizung hervorbringt.
Bei den Kontraktionsbewegungen treten die expansorischen Wirkungen der galvanischen Reizung in den Hintergrund, und wir haben ja bereits gesehen, daß es nur in gewissen Fällen möglich ist, dieselben überhaupt zu beobachten. Dagegen machen sich die kontraktorischen Wirkungen überall bemerkbar. Schon am Actinosphaerium und der Amphistegina sahen wir die typischen Kontraktionsvorgänge in der Kugel- und Spindelbildung des Protoplasmas der erregten Pseudopodien. Amöben und Leukocyten ziehen auf einzelne Induktionsschläge hin, wie GOLUBEW[462] und ENGELMANN[463] gezeigt haben, ihre Pseudopodien ein und nehmen Kugelform an. Das Protoplasma der Pflanzenzellen wird, wie KÜHNE[464] an den Zellen der Staubfädenhaare von Tradescantia virginica nachwies, durch wiederholte Schließung und Oeffnung des konstanten Stromes oder durch einzelne Induktionsschläge ebenso zur Bildung von Kugeln veranlaßt, wie sie auch für die nackten Protoplasmaformen charakteristisch ist, eine Wirkung, die auch bei lokaler Anwendung der Reize lokal erzielt werden kann.
Die Tätigkeit der Flimmerhaare wird, wie ENGELMANN[465] und in neuerer Zeit KRAFT[466] an Flimmerepithelien beobachtet haben, durch den galvanischen Strom zu größerer Geschwindigkeit gesteigert, indem besonders die Frequenz und Amplitude des Wimperschlages und damit der Nutzeffekt beeinflußt wird. Auch am einzelnen Geißelfaden der Flagellatenzelle, z. B. von Peranema, kann man die erregende Wirkung des elektrischen Reizes beobachten, die sich z. B. bei Einwirkung eines einzelnen Induktionsschlages in einem energischen Schlage der sonst gleichmäßig rhythmisch schwingenden Geißel äußert.
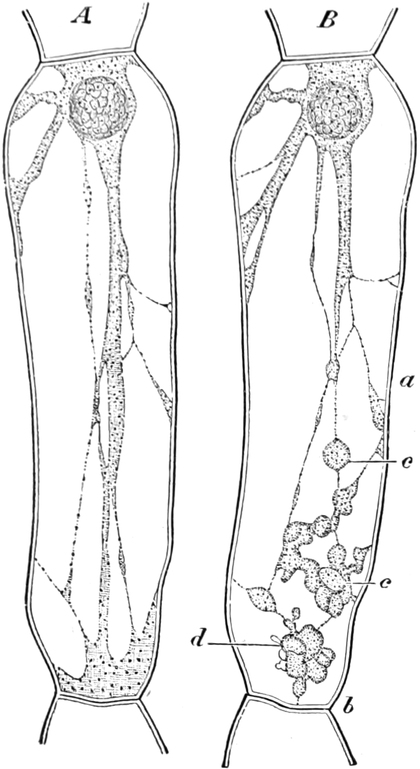
Fig. 222.
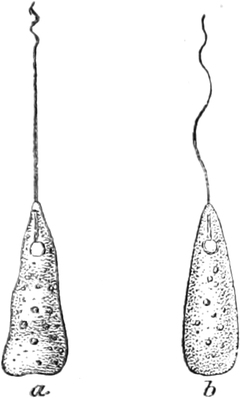
Fig. 223.
Fig. 222. Tradescantia virginica. Eine Zelle aus den Staubfädenhaaren. A Ungereizt, B durch den Induktionsstrom gereizt. Das Protoplasma ist bei a, b, c, d zu Kugeln und Klumpen zusammengeflossen. Nach KÜHNE.
Fig. 223. Peranema, ein Geißelinfusor. a Ruhig schwimmend, b durch einen Induktionsschlag gereizt.
Bei den Myoiden der Infusorien, wie z. B. beim Stielmyoid der Vorticellen, ferner bei den glatten Muskelzellen und schließlich bei den quergestreiften Muskelfasern kommt die Erregung durch einen einzelnen kurzen elektrischen Reiz, etwa einen einzelnen Induktionsschlag, in einer Zuckung zum Ausdruck, die man bei quergestreiften Skelettmuskeln mittels eines Myographions graphisch verzeichnen kann.
Fig. 224.
I
Myographion
.
II
Zuckungskurve
. Nach H
ELMHOLTZ
.
a
Moment der Reizung durch einen Induktionsschlag. Die zweite Erhebung beruht auf Fehlern des Apparates.
Fig. 225.
Muskelschreiber
. In dem Muskelhalter ist das Nervmuskelpräparat befestigt, dessen Nerv durch zwei Platinelektrodenspitzen gereizt wird und dessen Muskel durch Uebertragung auf einen Schreibhebel seine Bewegung auf eine rotierende schwarze Trommel aufzeichnet.
Ehe wir aber die Betrachtung der Reizwirkungen an den kontraktilen Substanzen verlassen, verdient noch die Wirkung schnell aufeinanderfolgender elektrischer Reize unsere Aufmerksamkeit. Wir haben nämlich in den rhythmisch sich folgenden Induktionsschlägen des DU BOIS-REYMONDschen Schlittenapparates bei tätigem Hammer das beste Mittel, um ein kontraktiles Gebilde in tetanische Dauerkontraktion zu versetzen. Eine Amöbe, ein Leukocyt etc. bleiben unter rhythmisch aufeinanderfolgenden Induktionsschlägen, solange die Einwirkung dauert, im Kontraktionsstadium, d. h. sie behalten Kugelform. Ebenso bleibt der Muskel unter der Einwirkung rhythmisch intermittierender Induktionsströme dauernd kontrahiert. Am Muskel aber haben wir die günstigste Gelegenheit, die Entstehung des Tetanus zu verfolgen und uns besser als bei mechanischer Reizung davon zu überzeugen, daß die tetanische Kontraktion aus distinuierlichen Einzelzuckungen entsteht, die sich nur so schnell folgen, daß zwischen den einzelnen Kontraktionen dem Muskel keine Zeit bleibt, sich wieder zu strecken. Um die Einzelheiten der tetanischen Kontraktion zu studieren, bedienen wir uns eines Myographions (Fig. 224 I und Fig. 225), dessen Schreibhebel uns die Bewegung des Muskels bei der Reizung in Gestalt einer Kurve auf einer rotierenden Trommel verzeichnet. Reizen wir den Muskel mittels eines einzigen, nicht zu starken Induktionsschlages, so daß er nur eine mäßige Zuckung ausführt, so bekommen wir eine einzelne Zuckungskurve, deren aufsteigender Schenkel die Kontraktionsphase, deren absteigender Schenkel die Expansionsphase darstellt (Fig. 224 II). Lassen wir aber mehrere Induktionsschläge nacheinander auf den Muskel einwirken, und zwar in regelmäßigen Intervallen in der Weise, daß jeder folgende Reiz den Muskel immer in dem Moment trifft, in dem er eben wieder beginnt sich zu strecken, so finden wir, daß sich die ersten Zuckungen superponieren, d. h. daß die Verkürzung des Muskels mit jeder folgenden Zuckung größer wird, so, als ob der Verkürzungsgrad, den der Muskel noch von der vorhergehenden Zuckung hatte, dem Ruhepunkt des Muskels entspräche, von dem aus sich die Verkürzung der nächsten Zuckung erhebt. So steigt die Verkürzung treppenartig mit jedem folgenden Reiz bis zu einer bestimmten Höhe, auf der sie sich dann erhält, auf der sie aber doch noch deutlich die regelmäßigen Schwankungen zwischen den einzelnen Reizen erkennen läßt (Fig. 226 II). Lassen wir schließlich schneller aufeinanderfolgende Induktionsschläge auf den Muskel einwirken, wie sie beim Spiel des NEEFschen Hammers in der sekundären Spirale entstehen, dann ist die Wirkung jedes einzelnen Reizes nicht mehr als solche zu unterscheiden, sondern wir bekommen eine glatte Kurve, die ziemlich steil ansteigt und sich dann, wenn die Reizung nicht zu lange ausgedehnt wird, als gerade Linie auf gleicher Höhe erhält (Fig. 226 III). So können wir von vollkommen ausgebildeten Einzelzuckungen an, indem wir die Geschwindigkeit der Aufeinanderfolge der Reize steigern, durch alle Uebergangsformen des unvollkommenen Tetanus hindurch die Entstehung des vollkommenen Tetanus verfolgen und damit den Beweis liefern, daß der Tetanus in Wirklichkeit auf distinuierlichen Vorgängen beruht. Die Tatsache, daß die maximale Verkürzung des Muskels, die man mit einem Einzelreiz erzielen kann, immer etwa 2–5mal niedriger ist als die Verkürzung, die man bei tetanischer Reizung mit derselben Reizstärke erhält, wird, wie FRÖHLICH[467] gezeigt hat, lediglich dadurch bedingt, daß bei der Einzelzuckung niemals die ganze Strecke des Muskels ihrer Länge nach gleichzeitig kontrahiert ist. Es ist vielmehr, während z. B. die obere Partie des Muskels schon kontrahiert ist, die untere noch erschlafft und während die Kontraktionswelle, die von oben nach unten hin verläuft, in die untere Partie vorgedrungen ist, die obere Partie bereits wieder gestreckt. Die Prozesse verlaufen eben so schnell, daß es gar nicht möglich ist, durch einen Einzelreiz, der eine von einem Ende ausgehende Kontraktionswelle auslöst, alle Punkte des Muskels gleichzeitig in Kontraktion zu versetzen. Folgen aber Einzelreize schnell genug aufeinander, wie bei tetanischer Reizung so kann man den ganzen Muskel in allen seinen Punkten gleichzeitig in Kontraktion versetzen und erhält infolgedessen eine viel stärkere Verkürzung. Das ist die Superposition im Tetanus.