Viertes Kapitel. Von den allgemeinen Lebensbedingungen.
Reading edition
I. Die jetzigen Lebensbedingungen auf der Erdoberfläche.
A. Die allgemeinen äußeren Lebensbedingungen.
1. Die Nahrung.
2. Das Wasser.
3. Der Sauerstoff.
4. Die Temperatur.
5. Der osmotische Druck.
6. Der mechanische Druck.
B. Die allgemeinen inneren Lebensbedingungen.
II. Die Herkunft des Lebens auf der Erde.
A. Die Theorien über die Herkunft des Lebens auf der Erde.
1. Die Lehre von der Urzeugung.
2. Die Lehre von den Kosmozoen.
3. PREYERs Theorie von der Kontinuität des Lebens.
4. PFLÜGERs Vorstellung.
5. Die Hypothese von F. J. ALLEN.
B. Die Kritisches.
1. Ewigkeit oder Entstehung der lebendigen Substanz.
2. Die Deszendenz der lebendigen Substanz.
III. Die Geschichte des Todes.
A. Die Vorgänge der Nekrobiose.
1. Histolytische Prozesse.
2. Metamorphotische Prozesse.
B. Die Bedingungen des Todes.
1. Aeußere und innere Todesbedingungen.
2. Die Frage nach der körperlichen Unsterblichkeit.
Die lebendige Substanz der Organismen bildet einen Teil der gesamten Stoffmenge, die unseren Erdkörper zusammensetzt. Ihre Unterschiede gegenüber den leblosen Substanzen sind, wie wir sahen, nicht prinzipieller Natur; denn dieselben Elemente, aus denen jene zusammengesetzt sind, bauen auch diese auf. Der Unterschied zwischen der organischen Substanz und den anorganischen Substanzen ist nicht größer als der Unterschied mancher anorganischen Substanzen untereinander und besteht allein in der Art und Weise, wie die Elementarstoffe zusammengefügt sind.
Es ist wichtig, daß wir uns an den Gedanken gewöhnen, die lebendige Substanz nicht als einen außer allem Zusammenhang stehenden, zu aller übrigen Materie im Gegensatz befindlichen, mystischen Stoff zu betrachten, sondern nur als einen Teil der Stoffe, welche die Erdrinde bilden. Dann ist es selbstverständlich, daß das Leben, wie jeder Vorgang in der Welt, durchaus bedingt ist durch die Beschaffenheit der Stoffe, die den Organismus aufbauen, und durch die Beschaffenheit der Umgebung, kurz, daß die Entwicklung der lebendigen Substanz untrennbar mit der Entwicklung des Erdkörpers verknüpft sein muß. Demnach ist die Zusammensetzung und Form der jetzigen lebendigen Substanz, welche die Erdoberfläche bedeckt, genau unter demselben Gesichtspunkt zu betrachten, wie etwa die Zusammensetzung der jetzigen Meere, d. h. als etwas allmählich Gewordenes, das nur in dieser jetzigen Beschaffenheit so existiert, weil die Bedingungen augenblicklich derartig sind. Wie die Meere mit ihren Salzen noch nicht in ihrer jetzigen Beschaffenheit existieren konnten, ehe das Wasser auf der Erde in tropfbar-flüssigem Zustande vorhanden war, ebenso konnte auch die lebendige Substanz zu jener Zeit noch nicht in ihrer jetzigen Zusammensetzung bestehen, denn sie enthält ja durchschnittlich über 50 Proz. Wasser. Wie aber das Wasser seine jetzige Form annehmen mußte, als bestimmte Bedingungen in der Erdentwicklung gegeben waren, so mußte auch die lebendige Substanz allmählich ihre jetzige Beschaffenheit erhalten in dem Maße, wie sich die jetzigen Verhältnisse der Erdoberfläche herausbildeten. Die Aussonderung der lebendigen Substanz aus den Stoffen der Erdrinde ist ebenso nur eine Folge der Erdentwicklung wie die Ausscheidung bestimmter Gesteine, bestimmter Salze oder des Wassers aus dem Stoffgemisch des Erdballes.
Zu derselben Vorstellung kommen wir von einem anderen Ausgangspunkte aus, wenn wir nämlich nicht die elementare Zusammensetzung, sondern die Lebensäußerungen der lebendigen Substanz ins Auge fassen. Es ist ein leicht begreiflicher, durch den oberflächlichen Eindruck hervorgerufener Irrtum, wenn man einen Organismus als ein selbständiges, in sich geschlossenes, von seiner Umgebung unabhängiges System betrachtet. Die Tatsache des Stoffwechsels klärt uns aber sofort über diesen Irrtum auf; denn wenn der Organismus nur lebt, solange er Stoffe von außen aufnimmt und nach außen abgibt, so steht er dadurch in der allerengsten Abhängigkeit von der Außenwelt: die Außenwelt bedingt sein Leben.
Auf diese Weise gelangen wir zu dem Begriff der „Lebensbedingungen“, d. h. der Bedingungen, die erfüllt sein müssen, wenn das Leben eines Organismus überhaupt bestehen soll. Da es ferner auf der Hand liegt, daß jede Veränderung der Lebensbedingungen einen Einfluß auf das Leben des Organismus ausüben muß, weil der spezifische Lebensvorgang eines jeden Organismus eindeutig bestimmt ist durch die Summe sämtlicher Lebensbedingungen, so ist es für die Vollständigkeit eines Bildes von den Beziehungen zwischen Organismenwelt und Lebensbedingungen erforderlich, nicht nur die Lebensbedingungen, wie sie jetzt sind, zu untersuchen, sondern auch die Lebensbedingungen in früheren Zeiten der Erdentwicklung ins Auge zu fassen, soweit wir überhaupt uns eine Vorstellung davon machen können, um so einige Anhaltspunkte zu gewinnen für die Frage nach der Herkunft, der Abstammung, der Entwicklung des Lebens auf der Erde.
I. Die jetzigen Lebensbedingungen auf der Erdoberfläche.
Nicht sämtliche Lebensbedingungen irgendeines Organismus sind für jeden anderen lebendigen Organismus in gleicher Weise notwendig. Ja, was für die Existenz des einen Organismus erforderlich ist, kann das Leben des anderen geradezu gefährden. Seetiere, in Süßwasser gebracht, gehen nach einiger Zeit zugrunde, und Süßwassertiere, in Seewasser gesetzt, verfallen demselben Schicksal. Das gilt aber nicht nur für große Organismengruppen, das gilt auch für jede einzelne Organismenform. Jeder einzelne Organismus braucht für seine Existenz ganz bestimmte spezielle Bedingungen, ohne deren Erfüllung er nicht dauernd am Leben bleibt. Diese „speziellen Lebensbedingungen“ sind so mannigfaltig wie die unermeßliche Fülle der Organismenformen selbst, denn ein jeder Organismus ist nichts anderes als die Summe seiner sämtlichen Lebensbedingungen. Die speziellen Lebensbedingungen der einzelnen Organismen beschreiben, hieße daher, die gesamte Naturgeschichte jedes einzelnen Organismus schildern. Diese Aufgabe gehört in das Gebiet der speziellen Physiologie. Allein, diesen speziellen Lebensbedingungen gegenüber gibt es Bedingungen, die für alle Organismen erfüllt sein müssen, damit sie leben können, und diese Bedingungen müssen daher als „allgemeine Lebensbedingungen“ gelten. Wir werden uns in der allgemeinen Physiologie nur mit den allgemeinen Lebensbedingungen der Organismen zu beschäftigen haben und können auf einzelne spezielle Lebensbedingungen nur gelegentlich einen Blick werfen, wenn sie gerade besonderes Interesse erfordern, d. h. wenn sie für besonders große Gruppen von Organismen nötig sind oder wenn sie uns die eigenartige Anpassung der lebendigen Substanz an besonders eigentümliche Verhältnisse vor Augen führen.
Gewöhnlich ist man geneigt, bei dem Begriff „Lebensbedingungen“ nur an äußere Faktoren, wie Nahrung, Wasser, Sauerstoff, Temperatur, osmotischen und mechanischen Druck zu denken. Indessen stehen diesen äußeren Lebensbedingungen auch innere Lebensbedingungen gegenüber, die in der Zusammensetzung des Organismus selbst liegen, und deren Wegfall ebenso den Tod des Organismus zur Folge hat wie der Fortfall der äußeren Lebensbedingungen.
A. Die allgemeinen äußeren Lebensbedingungen.
1. Die Nahrung.
Das Vorhandensein von Nahrung ist diejenige Lebensbedingung, die ohne weiteres aus der Tatsache des Stoffwechsels sich ergibt. Wenn die lebendige Substanz sich fortwährend von selbst zersetzt, dann muß, falls sie dauernd am Leben bleiben soll, von außen her ein Strom von Stoffen in sie eintreten, der alle diejenigen chemischen Elemente enthält, die zum Aufbau der lebendigen Substanz notwendig sind. Die Summe dieser chemischen Stoffe, die in den Organismus eintreten, bildet die Nahrung. Danach gehören also Wasser und Sauerstoff ebenfalls zu dem allgemeinen Begriff der Nahrung; indessen pflegt man diese beiden Stoffe in der Regel davon zu trennen. Wir wollen sie daher, diesem Sprachgebrauch folgend, auch besonders für sich betrachten und zuerst nur auf die Nahrung im spezielleren Sinne eingehen.
Die zwölf allgemeinen organischen Elemente, aus denen alle lebendige Substanz zusammengesetzt ist (p. 108), müssen in irgendwelcher Form als Nahrung in den Körper des Organismus gelangen. Darin liegt die allgemeine Bedeutung der Nahrung. Im speziellen aber sind die chemischen Verbindungen, in denen diese Elemente in den Körper eingeführt werden, für die verschiedenen Organismenformen ebenso mannigfaltig wie die Organismenformen selbst. Es gibt nicht eine allgemeine Nahrung für alle Organismen, und wir haben schon bei früherer Gelegenheit gesehen[255], daß sich die Organismen nach der Art der Nahrungsstoffe und der Weise, wie sich aus denselben ihre lebendige Substanz aufbaut, in mehrere große Gruppen, in Pflanzen, Pilze, Tiere, unterscheiden lassen. Während die grünen Pflanzen ihre lebendige Substanz allein aus anorganischem Material, aus Kohlensäure und verschiedenen Salzlösungen aufzubauen vermögen, bedürfen die Tiere unbedingt organischer Nahrung und können ohne komplizierte organische Verbindungen, wie Eiweiß, Kohlehydrate, Fette etc., nicht leben. Die Pilze aber stehen gewissermaßen zwischen diesen beiden Gruppen, indem sie ihren Stickstoffbedarf zwar aus anorganischen Salzen bestreiten können, dagegen zur Deckung ihres Kohlenstoffbedarfs organische Verbindungen brauchen. Eine Ausnahme davon machen nur gewisse Bakterienformen, wie die interessanten Stickstoffbakterien, die ihren Stickstoff und Kohlenstoff aus kohlensaurem Ammon beziehen, also wie die grünen Pflanzen ausschließlich von anorganischen Nahrungsstoffen leben. Aber wie auch die Nahrung im einzelnen Fall beschaffen sein mag, ohne irgendwelche Nahrung kann kein lebendiger Körper auf die Dauer leben.
Ueber die quantitativen Bedingungen der Nahrung, über das Maximum und Minimum an Nahrung, das ein lebendiger Körper braucht, und das für jede Organismenform ein anderes ist, liegen bisher nur für wenige spezielle Verhältnisse und ausschließlich an höheren Wirbeltieren Untersuchungen vor. Das sind Fragen, die im speziellen noch ihrer Lösung harren, und die, zellularphysiologisch behandelt, zu theoretisch und praktisch gleich wichtigen Ergebnissen führen dürften. Bisher hat man nur einzelne Werte für den Gesamtorganismus des Menschen ermittelt. VOIT[256] hat gefunden, daß ein erwachsener Mann bei angestrengter Arbeit dauernd mit einem täglichen Kostmaß von 118 g Eiweiß, 56 g Fett und 500 g Kohlehydraten existieren kann. Bei einer solchen Kost befindet sich der Mensch im „Stoffwechselgleichgewicht“, d. h. die durch den Harn, den Schweiß, die Exspiration, die Faeces etc. ausgeschiedenen Mengen der Elementarstoffe sind gleich denen, welche mit der Nahrung eingeführt werden. Indessen, man muß hier noch etwas mehr spezialisieren und muß diese Werte für die einzelnen mit der Nahrung eingeführten Elementarstoffe, wie Stickstoff, Kohlenstoff etc., gesondert bestimmen. Besonders wichtig ist in dieser Beziehung für den tierischen Körper die Bestimmung des Stickstoffwechsels, denn der Stickstoff ist das charakteristische Element der Eiweißkörper, ohne die kein Tier auf die Dauer existieren kann. Bei dieser Bestimmung hat sich ergeben, daß schon mit einer Eiweißmenge von nur 50 g, welcher eine Stickstoffmenge von etwa 7,5 g entspricht, „Stickstoffgleichgewicht“ erzielt werden kann, falls nur die Menge der stickstofffreien Nahrungsstoffe, der Kohlehydrate und Fette, entsprechend gesteigert wird. 7,5 g würde also etwa dem täglichen Stickstoffminimum entsprechen, bei dem ein Mensch noch eben existieren kann. In neuerer Zeit sind besonders in Amerika umfangreiche Stoffwechselversuche in großem Maßstabe am Menschen angestellt worden. Bei diesen Untersuchungen ist CHITTENDEN[257] zu dem Resultat gekommen, daß selbst für stark arbeitende Männer das von VOIT zuerst angegebene Kostmaß viel zu hoch ist. Vor allem betont CHITTENDEN mit Recht, daß bei den Kulturnationen im allgemeinen viel zu viel Eiweiß in der Nahrung aufgenommen wird. Das bedeutet nicht nur einen Luxus, sondern auf die Dauer auch direkt eine Schädigung des Organismus. Einerseits nämlich werden durch die Spaltung des Eiweißes und die Ausscheidung der Spaltungsprodukte viel zu hohe Anforderungen an Verdauungsorgane und Nieren gestellt und anderseits überschwemmen die Spaltungsprodukte des Eiweißes den ganzen Organismus und entfalten in ihm toxische Wirkungen. Chittenden findet, daß mit 55 g Eiweiß pro die der Mensch seinen Stickstoffbedarf vollständig decken kann, so daß er, falls nur die Gesamtenergiemenge der täglichen Nahrung 2000–2500 Kalorien beträgt, dabei körperlich wie geistig vollkommen leistungsfähig und was besonders wichtig ist — gesunder bleibt, als bei reichlicherer Eiweißkost.
Das Nahrungsminimum, bei dem eben noch Stoffwechselgleichgewicht besteht, bei dem das Leben eben noch dauernd erhalten werden kann, ist von großer Bedeutung. Wird die Nahrungszufuhr über das Minimum gesteigert, so ist das Stoffwechselgleichgewicht nur in sehr geringem Maße gestört, indem nur sehr geringe Mengen von Elementarstoffen in den Ausscheidungen weniger auftreten, als der mit der Nahrung aufgenommenen Menge entspricht. Diese sehr geringen Mengen bleiben im Körper zurück und dienen zur Vermehrung der lebendigen Substanz und zur Aufspeicherung von Reservestoffen, ein Vorgang, den man in der Landwirtschaft als „Mästung“ bezeichnet. Indessen hängt das Zustandekommen der Mästung noch von vielen einzelnen Faktoren ab, die zum Teil noch nicht genauer bekannt geworden sind. Sinkt dagegen umgekehrt die Nahrungsmenge unter das Minimum, oder wird sie gleich Null, so tritt der Zustand des „Hungers“, der „Inanition“, ein, in dem das Stoffwechselgleichgewicht mehr und mehr gestört wird. Dieser Zustand ist bereits etwas genauer untersucht worden.
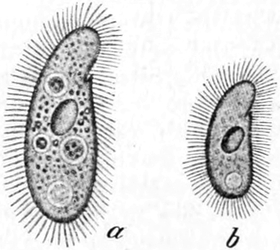
Fig. 140.
Colpidium colpoda, eine Wimperinfusorienzelle
.
a
Im normalen Zustande,
b
im Zustande der Inanition. Der Zellkörper ist kleiner und durchsichtiger geworden, die Granula im Innern sind verschwunden. Vergrößerung in beiden Fällen 260. Nach Beobachtungen und Zeichnungen von J
ENSEN
.
Es lohnt sich, die Veränderungen, die der lebendige Organismus im Zustande der Inanition erfährt, etwas genauer zu verfolgen. Jede lebendige Zelle, die sich unter normalen Bedingungen befindet, hat mehr oder weniger Stoffe in sich, auf deren Kosten der Lebensprozeß noch eine Zeitlang weiter geht, wenn ihr die Nahrungszufuhr abgeschnitten ist. Das sind ihre Reservestoffe. Es ist daher eine allgemeine Tatsache, daß zunächst die Reservestoffe während der Inanition verschwinden. Pflanzenzellen, die mit Stärkekörnern angefüllt sind, verbrauchen diese, wenn sie ins Dunkle gebracht werden, d. h. wenn sie hungern müssen, denn im Dunkeln findet keine Assimilation von Stärke aus Kohlensäure und Wasser, also keine Ernährung mehr statt. Infusorien, deren Zellkörper in ihrer Infusion, wo sie in Nahrungsüberfluß schwelgen, allerlei Körnchen und Granula enthält und infolgedessen undurchsichtig körnig aussieht, werden, wenn sie in Wasser mit möglichst wenig Nahrungsstoffen gesetzt werden, heller, durchsichtiger und körnchenfrei. Dabei wird der Zellkörper kleiner und kleiner (Fig. 140). Die Zelle stirbt also nicht gleich im Moment der Nahrungsentziehung, sondern lebt noch eine Zeitlang weiter auf Kosten der Stoffe ihres eigenen Zellkörpers. Sind diese verbraucht, so geht sie allmählich zugrunde — ebenso wie eine Uhr, die nicht mehr aufgezogen wird, allmählich abläuft und dann stehen bleibt. Die Inanitionsveränderungen der einzelnen Zelle sind erst kürzlich zum ersten Male methodisch studiert worden von WALLENGREN[258] im Göttinger physiologischen Laboratorium an Paramaecium und gleichzeitig am selben Material im Münchener zoologischen Institut von KASANZEFF[259]. Dabei zeigte sich, daß im Hunger zunächst alle sogenannten „Granula“ des Protoplasmas verbraucht werden, so daß das Entoplasma ein helles und homogenes Aussehen annimmt. Dann beginnt das Entoplasma selbst einzuschmelzen. Später erst wird das Ektoplasma mit seinen Differenzierungen, wie Wimpern etc., in Angriff genommen und endlich, wenn die Masse des Protoplasmas bereits stark reduziert und durch Vakuolenbildung vollkommen deformiert ist, zerfällt auch der nukleinreiche Makronucleus bis auf sein Kernkörperchen. Bis zuletzt dagegen bleibt nahezu unverändert der Mikronucleus. Zum Schluß fällt der Rest der Zelle dem körnigen Zerfall anheim. Diese Reihenfolge, in der die einzelnen Teile der Zelle in Angriff genommen werden, ist interessant. Sie richtet sich ganz nach der Bedeutung, welche dieselben für die Erhaltung des Lebens haben. Zuerst wird das Reservematerial verbraucht, dann die eigene Zellsubstanz, und zwar erst die entbehrlichen, später die lebenswichtigeren Teile. Zum Schluß bleibt nur noch ein wenig Protoplasma und ein Rest Kernsubstanz übrig. Solange dieser Rest der Zelle noch nicht dem Zerfall unterliegt, ist er auch noch fähig, bei Nahrungszufuhr die ganze Zelle wieder zu regenerieren. Man sieht, wie die Zelle beim Hunger noch lange gegen den Untergang geschützt ist, und wie ihr bis zum letzten Augenblick noch die Möglichkeit einer Rettung gesichert ist, gewiß eine ganz außerordentlich nützliche Anpassung der lebendigen Substanz.
Da es eine charakteristische Eigentümlichkeit der lebendigen Substanz ist, daß sie sich fortwährend von selbst zersetzt, so ist es klar, daß bei hungernden Tieren das Stoffwechselgleichgewicht gestört sein muß. Mit den Zerfallsprodukten der lebendigen Substanz werden fortwährend Stickstoff, Kohlenstoff, Wasserstoff, Sauerstoff etc. ausgeschieden, während keine neue Zufuhr stattfindet. Die Folge davon ist, daß wie bei der einzelnen Zelle, so auch beim vielzelligen Organismus sich die lebendige Substanz allmählich mehr und mehr selbst aufzehrt und an Gewicht abnimmt. Auch das vielzellige Tier lebt also noch eine Zeitlang von den eigenen Geweben. Daher ist es begreiflich, daß die Pflanzenfresser in dem Verhalten ihrer Ausscheidungen den Fleischfressern ähnlich werden. Der Harn der Pflanzenfresser, der bei normaler Ernährung alkalisch und trübe ist, wird in der Inanition sauer und klar wie der Harn der Fleischfresser, denn die Pflanzenfresser leben ja in der Inanition von ihrem eigenen, also von tierischem Gewebe, sie werden gewissermaßen zu Fleischfressern. So zehrt sich die lebendige Substanz allmählich mehr und mehr auf, bis das Körpergewicht einen so großen Verlust erfahren hat, daß das Tier zugrunde geht. CHOSSAT[260] hat diese Grenze der Gewichtsabnahme durch viele Versuche festgestellt und hat gefunden, daß bei den verschiedensten Tieren der Tod eintritt, wenn der Gewichtsverlust etwa den 0,4 Teil des ganzen Körpergewichts erreicht hat. Allein dieser Wert wird von verschiedenen Tieren erst nach sehr verschieden langer Zeit erreicht. Frösche leben länger als ein Jahr, und der Proteus anguineus, jenes eigentümliche Amphibium der Adelsberger Grotten, angeblich mehrere Jahre ohne Nahrung. Der Mensch stirbt in verhältnismäßig kurzer Zeit. Früher hatte man nur selten Gelegenheit, Menschen, die lange Zeit hungerten, zu untersuchen, und die früheren Angaben sind auch mit Vorsicht aufzunehmen. So soll im Jahre 1831 in Toulouse ein Sträfling, der nur Wasser zu sich genommen hätte, erst nach 63 Tagen gestorben sein. In neuerer Zeit, seitdem das wahrhaft „brotlose“ Gewerbe der „Hungerkünstler“ aufgekommen ist, haben die Physiologen öfter Gelegenheit gehabt, exakte Untersuchungen an hungernden Menschen zu machen, und LUCIANI[261] hat uns eine ausgezeichnete Monographie über das Hungern geliefert, die basiert auf Untersuchungen an dem bekannten Hungerkünstler SUCCI, der sich einem 30-tägigen Fasten unter seiner Aufsicht unterzog. Durch den Fall SUCCI ist zweifellos bewiesen, daß ein normaler Mensch unter günstigen Bedingungen sicher wenigstens 30 Tage lang ohne Nahrung existieren kann.
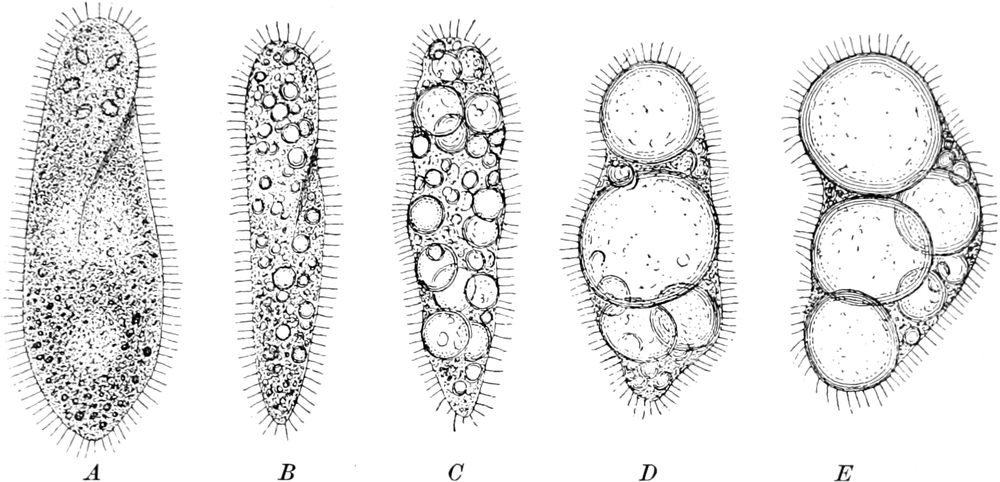
Fig. 141.
Paramaecium aurelia
.
A
normal;
B
,
C
,
D
,
E
im Hungerzustande mit zunehmender Vacuolisation und Formveränderung des Zellkörpers
An dem Gewichtsverluste des Körpers sind die verschiedenen Gewebe in sehr verschiedenem Maße beteiligt. Während die Zellen mancher Gewebe sehr schnell und in hohem Grade beeinträchtigt werden, erfahren diejenigen anderer Gewebe nur geringfügige Veränderungen. Man überzeugt sich davon durch folgenden Versuch CHOSSATs. Zwei Tauben desselben Geleges von gleicher Größe, gleichem Geschlecht und gleichem Gewicht werden als Versuchsobjekte benutzt. Die eine wird sofort getötet, und ihre einzelnen Gewebe werden gewogen. Die andere läßt man hungern, bis sie stirbt, um dann an ihren Geweben die gleichen Wägungen vorzunehmen. Auf diese Weise ermittelt man, welche Veränderungen des Gewichts die einzelnen Gewebe während der Inanition erfahren haben. Dabei findet man, daß das Fettgewebe etwa 93 Proz. seines Gewichts verloren hat, das Gewebe der Milz, des Pankreas, der Leber 71 bis 62 Proz., das der Muskeln 45–34 Proz., der Haut, der Nieren, der Lungen 33–22 Proz., der Knochen 17 Proz. und das des Nervensystems nur etwa 2 Proz. Das Fettgewebe wird also am meisten, das Nervensystem am wenigsten betroffen. Wir haben uns freilich diese Verschiedenheiten in der Gewichtsabnahme der einzelnen Gewebe- oder Zellenarten jedenfalls nicht so zu denken, daß sie bloß auf einer verschieden schnellen Abnahme jeder Zellengattung durch die Entziehung der Zufuhr von Nährstoffen beruht. LUCIANI ist vielmehr mit Recht der Ansicht, daß daneben noch ein anderer Faktor eine Rolle spielt, daß nämlich unter den verschiedenartigen Gewebezellen ein Kampf um die Nahrung in der Weise besteht, daß die einen die im Körper vorhandenen Reservestoffe gieriger an sich reißen als die anderen und schließlich nach Verbrauch der Reservestoffe sich auch noch das Stoffmaterial der anderen selbst aneignen, um ihren Stoffwechsel zu unterhalten. Daraufhin deutet wenigstens eine interessante Beobachtung MIESCHERs[263]. Wenn die Rheinlachse aus dem Meer stromaufwärts in den Rhein wandern, sind sie kräftige, muskulöse Tiere von gutem Ernährungszustande. Während ihres 6–9-monatlichen Aufenthalts im Rhein hungern die Lachse. Dabei zeigt sich, daß ihre Muskeln, besonders die des Rückens, enorm an Volumen abnehmen, während die Geschlechtsorgane sich ganz außerordentlich entwickeln. Hier findet also ein Kampf ums Dasein unter den Gewebeelementen der Geschlechtsorgane und der Muskeln statt, in dem die ersteren sich überlegen erweisen und sich die Substanz der letzteren für ihren eigenen Bedarf aneignen. In ähnlicher Weise wird jedenfalls auch zwischen anderen Gewebeelementen und bei anderen Tieren im Inanitionszustande ein Kampf um die Existenz stattfinden, und die gleiche Tatsache finden wir bereits an der einzelnen Zelle, wie uns die oben angeführten Untersuchungen von WALLENGREN (l. c.) an Infusorienzellen gezeigt haben. Die letzte Folge alles Hungerns ist aber immer der Tod. Die Uhr läuft schließlich ab, wenn sie nicht mehr aufgezogen wird.
Wenn wir den Tod als das Endergebnis alles Hungerns hinstellen, so bedarf diese Behauptung allerdings noch einer gewissen Berichtigung. Sie gilt für die Organismen nur, solange sie sich im Zustande des aktuellen Lebens befinden. Die Organismen im Zustande des latenten Lebens, wie die eingetrockneten Rädertierchen, Bärentierchen, Bakteriensporen, Samenkörner etc., bedürfen keiner Nahrung, denn, wie wir sahen[264], ist bei ihnen auch mit den feinsten Hilfsmitteln kein Stoffwechsel nachzuweisen. Sie sterben also auch nicht, wenn die Nahrung in ihrer Umgebung fehlt. Hier ist die Uhr nur angehalten, aber nicht abgelaufen.
** *
Um schließlich noch eine Vorstellung zu gewinnen von den weitgehenden Anpassungen einzelner Organismen an spezielle Lebensbedingungen ganz ungewöhnlicher Art, soweit sie die Nahrung betreffen, brauchen wir nur einen Blick auf die eigentümlichen Lebensverhältnisse gewisser Bakterienformen zu werfen, die besonders durch die ausgezeichneten Arbeiten WINOGRADSKYs bekannt geworden sind.
Die „Schwefelbakterien“ (Beggiatoa) bilden eine Mikrobenfamilie, die in faulenden Tümpeln und Pfützen des Süßwassers sowohl wie des Meerwassers lebt. Diese merkwürdigen Wesen, die als kurze Stäbchen oder lange Fäden (Fig. 142) im Wasser umherwimmeln, können nur existieren, wenn ihnen nicht unbedeutende Mengen von Schwefelwasserstoff zur Verfügung stehen. Den Schwefelwasserstoff brauchen sie zu ihrem Stoffwechsel, indem sie aus ihm durch Oxydation freien Schwefel bilden, den sie in Gestalt von feinen, stark lichtbrechenden Körnchen in ihrem winzigen Zellleibe aufspeichern (Fig. 142), um ihn weiterhin durch fortgesetzte Oxydation in Schwefelsäure überzuführen und in dieser Form nach außen wieder abzuscheiden. Bringt man die Schwefelbakterien in Brunnenwasser, das keinen Schwefelwasserstoff enthält, so gehen sie, nachdem sie den in ihrem Körper vorhandenen Vorrat an Schwefel oxydiert und ausgeschieden haben, zugrunde. Der Schwefelwasserstoff, ein Gas, das auf die meisten Organismen geradezu giftig wirkt, gehört also zu ihren Lebensbedingungen. Ohne Schwefelwasserstoff können sie nicht dauernd existieren[265].
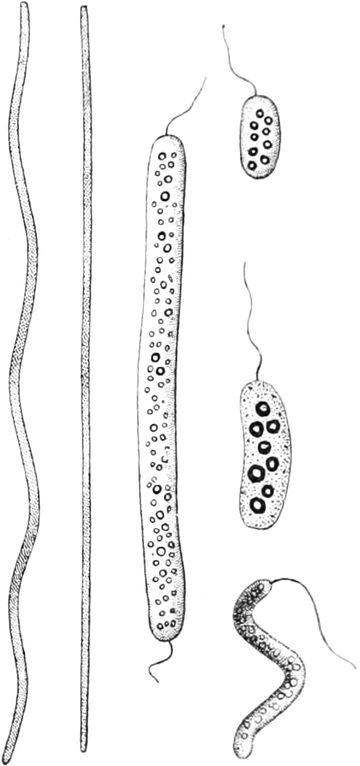
Fig. 142.
Verschiedene Formen von Schwefelbakterien
. Die Körnchen im Innern sind Schwefelkörnchen. Nach S
CHENK
und W
ARMING
.
Eine ähnliche, ganz spezielle Anpassung an eigentümliche Lebensbedingungen hat WINOGRADSKY bei den „Eisenbakterien“ nachgewiesen[266]. Allgemein bekannt sind die in sumpfigen Gegenden weitverbreiteten „Raseneisensteinmoore“ mit dem fettigen, bunt schillernden Häutchen an der Oberfläche ihrer flachen Wasserschicht und dem dicken, rötlichgelben Schlamm darunter. Das sind die Wohnsitze der Eisenbakterien, und die Produktion von Raseneisenstein ist zum Teil ihr Lebenswerk. Die Eisenbakterien brauchen nämlich kohlensaures Eisenoxydul, das im Wasser gelöst ist, zu ihrem Stoffwechsel. Dieses Eisenkarbonat nehmen sie in sich auf und oxydieren es zu kohlensaurem Eisenoxyd, das sie nach außen wieder abgeben. Das ausgeschiedene kohlensaure Eisenoxyd geht dann mit der Zeit in bloßes Eisenoxyd über, das unlöslich ist und einen gelbbraunen Niederschlag auf den von den Bakterien ausgeschiedenen Gallerthüllen bildet, in denen ihre Leiber stecken. Kultiviert man die Eisenbakterien ohne kohlensaures Eisenoxydul, so werden ihre Lebensäußerungen immer schwächer, und schließlich scheint ein völliger Stillstand des Lebens einzutreten. Die Anwesenheit von kohlensaurem Eisenoxydul gehört also zu den Lebensbedingungen dieser merkwürdigen Mikroben.
Diese Beispiele mögen genügen, um zu zeigen, wie eigenartig die speziellen Lebensbedingungen hinsichtlich der Nahrung sich bei den verschiedenen Organismen gestalten können. Weiter auf diese speziellen Verhältnisse einzugehen, ist hier nicht der Ort; das gehört in das Gebiet der speziellen Physiologie.
2. Das Wasser.
Die lebendige Substanz ist flüssig. Es ist notwendig, daß wir uns an diese physikalische Fundamentaleigenschaft der lebendigen Substanz erinnern. Der flüssige, breiartige Zustand der lebendigen Substanz ist bedingt durch die Wassermenge, die sie enthält, und von der man sich leicht durch Abdampfen von lebendiger Substanz überzeugen kann. Nur flüssige Massen, nicht feste, nur Substanzen, die Wasser enthalten, können lebendig sein, denn nur mit dem flüssigen Zustande ist der Stoffwechsel vereinbar. Daher sind im Organismus alle Substanzen, die fest und starr sind, wie die Bindesubstanzen der Zähne, der Knochen etc., nicht lebendig. Desgleichen sinkt die Lebenstätigkeit bei Wasserentziehung. An eingetrockneten Räder- oder Bärentierchen sowie an trockenen Samen sind keine Lebensäußerungen mehr wahrzunehmen. Erst wenn die Samen durch Zufuhr von Wasser zum Aufquellen gebracht werden, erst wenn die Substanz ihrer Zellen wieder flüssig wird, beginnt das Leben sich zu äußern. Das Wasser gehört also zu den allgemeinen Lebensbedingungen. Wo kein Wasser ist, da ist kein Leben.
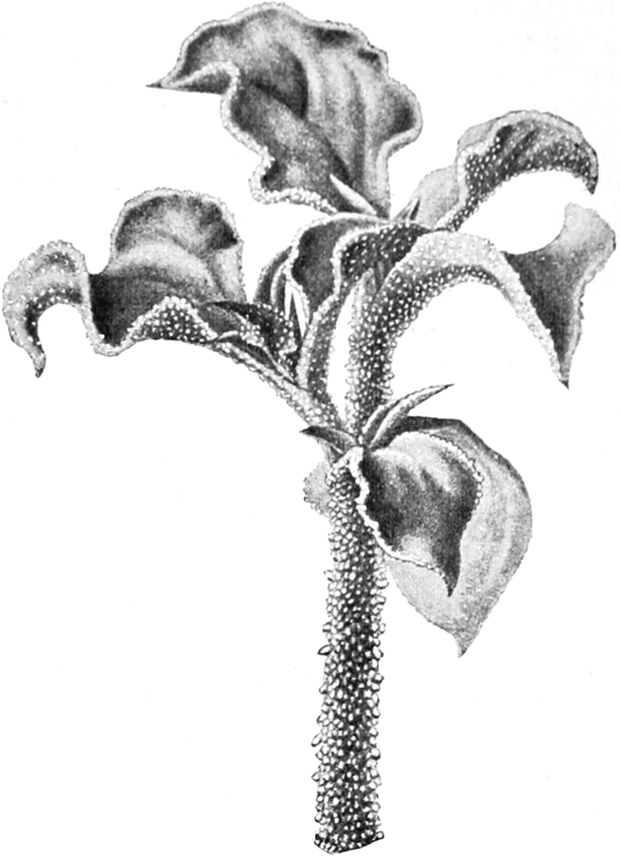
Fig. 143.
Mesembryanthemum crystallinum, eine Wüstenpflanze aus Südafrika
. Der ganze Stengel und die Unterseite der Blätter sind mit kristallhellen Wasserzellen besetzt.
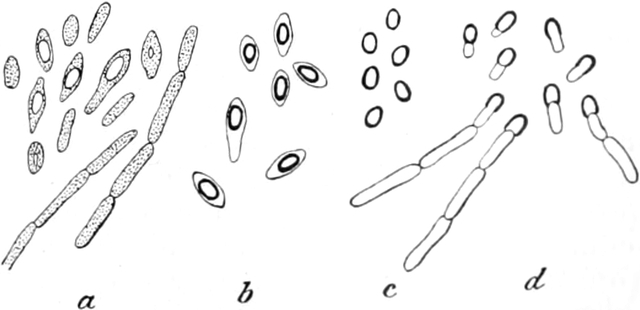
Fig. 144.
Bacillus butyricus bei der Sporenbildung
.
a
Beginnende Sporenbildung,
b
reife, aber noch in den Bacillenstäbchen befindliche Sporen,
c
Sporen nach Auflösung der Mutterzellmembran,
d
Sporen, die wieder zu keimen beginnen und Bacillen aus sich hervorgehen lassen. Nach M
IGULA
.
Diese Schlußfolgerung ist sehr einfach und klar. Allein es gibt Fälle, in denen auch an Orten der größten Trockenheit dauernd organisches Leben existiert. Jene öden, sonnendurchglühten Wüsten Asiens und Afrikas, die dem Reisenden das gewaltigste und ergreifendste Bild der Leblosigkeit vor Augen führen, deren endlose Sandflächen kaum einmal im Jahre von spärlichen Regengüssen benetzt werden, beherbergen trotz ihrer Trockenheit mannigfaltige Tier- und Pflanzenformen. Diese scheinbare Ausnahme beruht darauf, daß alle Wüstenorganismen in ganz eigentümlicher Weise an das Leben in langer Trockenheit angepaßt sind, indem sie mit dem wenigen Wasser, das ihnen in langen Zeiträumen zu Gebote steht, äußerst sparsam und haushälterisch wirtschaften. Man ist erstaunt, in der trockensten Wüste grüne Pflanzen zu treffen, die eine Fülle von Säften enthalten, Pflanzen (Mesembryanthemum crystallinum), über und über mit Zellen besät, die solche Mengen von klarem Wasser beherbergen, daß sie wie kleine kristallene Tröpfchen aussehen (Fig. 143). Diese Wüstenpflanzen halten das Wasser ungemein fest, indem sie entweder lösliche Stoffe von sehr großem Wasseranziehungsvermögen in ihrem Zellsaft aufspeichern, oder indem sie mit einer feinen Wachsschicht an ihrer ganzen Oberfläche überzogen sind, so daß bei geschlossenen Spaltöffnungen kaum eine Spur von Wasser durch Verdunstung aus dem Pflanzenkörper herausgelangen kann. Daneben besitzen sie meist sehr weit und flach unter dem Boden hinziehende, reichverzweigte Wurzeln, die jede Spur von Wasser gierig aufsaugen, das gelegentlich einmal die Erde benetzt. Auch die Tiere, die durch ihre geringe Lokomotionsfähigkeit an ihre trockene Heimat gefesselt sind, wie die Schnecken, schützen sich, indem sie ihre Wasserabgabe bis auf ein Minimum einschränken. Die Schnecken verschließen ihre Gehäuseöffnung mit einem doppelten, dichten Deckel, so daß kaum eine Spur von Wasser durch Verdunstung den Körper verlassen kann. Die Trockenheit der Umgebung erstreckt sich also in allen diesen Fällen nicht auf die lebendige Substanz der Wüstenorganismen. Diese ist vielmehr wie alle lebendige Substanz flüssig, und in der Tat haben alle Wüstenorganismen ein aktuelles Leben, nicht ein latentes, wenn dasselbe auch bis auf ein Minimum herabgesetzt ist. Kommt aber einmal ein leichter Regenguß, so fängt sofort ein frisches Leben an sich zu regen, die Pflanzen wachsen und blühen, und die trägen Tiere erwachen aus ihrem Sommerschlaf.
In etwas anderer Weise als die Wüstenpflanzen und Wüstentiere sind andere Organismen, die zeitweilig Wassermangel durchmachen müssen, an das Leben in der Trockenheit angepaßt, indem sie in der Trockenheit sogenannte „Dauerformen“ bilden, die gegen die Trockenheit geschützt sind. Solche Dauerformen kommen namentlich bei den einzelligen Organismen sehr weit verbreitet vor, wie die „Sporen“ der Bakterien (Fig. 144) oder die „Cysten“ der Rhizopoden, Sporozoen und Infusorien (Fig. 97, p. 246), die in einer dichten, völlig undurchlässigen Haut die lebendige Zellsubstanz einschließen. Auch die Samen der Pflanzen gehören zu diesen Dauerzuständen der Organismen. Indessen, bei allen diesen Dauerzuständen handelt es sich schon um latentes Leben, bei dem sich keine Spur von Lebensäußerungen selbst mit den feinsten Hilfsmitteln mehr nachweisen läßt. Wie wir wissen, steht in allen diesen Fällen das Leben in der Tat still wie eine aufgezogene Uhr, die plötzlich angehalten worden ist.
Aus diesen Tatsachen geht zur Genüge die Bedeutung des Wassers für die Unterhaltung des Lebens hervor. Ohne Wasser existiert kein Leben. Mit Zu- und Abnahme der Wasserversorgung der lebendigen Substanz innerhalb gewisser Grenzen steigt, sinkt und erlischt auch die Intensität des Lebens.
3. Der Sauerstoff.
PRIESTLEY, der Entdecker des Sauerstoffs, selbst war es, der die fundamentale Bedeutung dieses Gases für das Leben auf der Erde erkannte, indem er MAYOWs genialem Vergleich der Atmung mit einem Verbrennungsprozeß durch seine epochemachende Entdeckung des Sauerstoffs und seiner Eigenschaften eine reale Grundlage gab. In der Tat wird bei der Atmung freier Sauerstoff von der lebendigen Substanz aufgenommen und dafür Kohlensäure wieder ausgeschieden. Es muß also ein Verbrennungsprozeß, eine Oxydation des Kohlenstoffs in der lebendigen Substanz stattgefunden haben. Wenn sich daher alle Organismen wie der Mensch und die Säugetiere verhielten, an denen diese Verhältnisse der Atmung ermittelt worden sind, so würde man sagen müssen, daß der Sauerstoff eine allgemeine Lebensbedingung ist. Das war auch bis in die neueste Zeit hinein die übliche Auffassung. Man hatte aber, wie das in der Physiologie immer wieder geschehen ist, die wenigen Erfahrungen, die man an den Wirbeltieren gemacht hatte, zu früh verallgemeinert. Wir wissen heute, daß zwar für die ganze große Mehrzahl aller Organismen die Sauerstoffversorgung eine Lebensbedingung bildet, daß aber daneben eine kleine Gruppe von Organismen existiert, die ein Leben ohne Sauerstoff führen, ja die zum Teil sogar direkt bei Sauerstoffzutritt zugrunde gehen. Das sind die anaeroben Organismen. Freilich repräsentieren sie nur eine verhältnismäßig kleine Schar, die in einseitiger Weise an ganz spezielle Lebensbedingungen angepaßt ist, aber sie sind doch da und so können wir den Sauerstoff nicht als eine allgemeine Lebensbedingung der lebendigen Substanz ansprechen. Bei der ungeheuren Verbreitung der Sauerstoffatmung aber und bei dem hohen Interesse, das sie für die Auffassung der Lebensvorgänge hat, scheint es doch wohl gerechtfertigt, auch an dieser Stelle den Sauerstoff als Lebensbedingung neben den allgemeinen Lebensbedingungen zu betrachten, um so mehr, als man vielfach noch bis in die letzte Zeit hinein den Versuch gemacht hat, auch für die anaeroben Organismen eine Sauerstoffatmung wahrscheinlich zu machen und so die Sauerstoffversorgung der lebendigen Substanz als eine allgemeine Lebensbedingung zu retten. Man hat nämlich gesagt, es wäre denkbar, daß die anaeroben Organismen zwar keinen freien Sauerstoff aufnähmen, daß sie aber doch Sauerstoff für ihre Atmung aus chemischen Verbindungen bezögen. Indessen diese Auffassung hat sich nicht bestätigen lassen. Dagegen gibt es neuere Erfahrungen, die mit ihr nicht leicht vereinbar sein dürften. Es hat sich bei der Untersuchung dieser Fragen wiederum herausgestellt, wie äußerst wichtig es ist, daß die Physiologie sich mit ihren Versuchsobjekten nicht auf die paar üblichen Wirbeltiere, wie Mensch, Hund, Kaninchen, Meerschweinchen, Taube und Frosch beschränkt, sondern wie durchaus nötig es ist, daß sie auch den Kreis der wirbellosen Tiere und der einzelligen Organismen berücksichtigt, wenn sie sich vor einseitigen und falschen Vorstellungen selbst bezüglich der Vorgänge im menschlichen Körper bewahren will.
Berücksichtigt man diese Forderung bei der Untersuchung der Frage nach der Sauerstoffatmung der Organismen, so findet man, daß die Abhängigkeit verschiedener Organismenformen vom Sauerstoff ungemein verschieden ist. Man kann die Organismen je nach ihrer Abhängigkeit von der Sauerstoffzufuhr in eine lange Reihe einordnen. Das eine Ende dieser Reihe bilden die Warmblüter, d. h. die aeroben Organismen, die eine Sauerstoffentziehung nur ganz kurze Zeit überstehen, das entgegengesetzte Ende der Reihe die obligaten Anaeroben, die durch Zufuhr von Sauerstoff geschädigt werden und zugrunde gehen. Zwischen diesen beiden Polen ordnet sich die ganze übrige Zahl der Organismen ein, je nachdem sie mehr oder weniger Sauerstoff zum Leben brauchen oder, wie die fakultativen Anaeroben, sowohl mit als ohne Sauerstoff existieren können. Schreiten wir in unserer Betrachtung von einem Ende dieser Reihe nach dem andern hin.
Bekanntlich ist die Zusammensetzung der Atmosphäre in ihren wesentlichen Bestandteilen folgende: Stickstoff inkl. Argon 79,02, Sauerstoff 20,95 und Kohlensäure 0,03 Volumenteile. Diese Zusammensetzung ist stets und überall auf der Erdoberfläche die gleiche. Wenn wir daher die Landorganismen ins Auge fassen, an denen die meisten Untersuchungen über die Abhängigkeit vom Sauerstoff gemacht worden sind, so können wir sagen, daß sie dauernd in einer Atmosphäre leben, in der rund 21 Proz. Sauerstoff vorhanden sind. Die Untersuchungen von W. MÜLLER und PAUL BERT haben nun aber selbst für Säugetiere gezeigt, daß sie durchaus nicht an diesen Prozentgehalt und an den Druck von einer Atmosphäre gebunden sind. W. MÜLLER[267] hat nämlich gefunden, daß Säugetiere einerseits selbst mit 14 Proz. Sauerstoff noch dauernd existieren können und erst bei 7 Proz. Störungen erfahren, bis bei 3 Proz. der Erstickungstod eintritt, daß sie anderseits aber auch in reinem Sauerstoff bei dem Druck von einer Atmosphäre ausgezeichnet weiterleben. In entsprechender Weise geht auch aus einer Versuchsreihe, die PAUL BERT[268] veröffentlichte, eine weitgehende Unabhängigkeit der Tiere vom Partiardruck des Sauerstoffs hervor. In atmosphärischer Luft können Tiere noch bei einem Minimaldruck von ungefähr 250 mm Quecksilber und bei einem Maximaldruck von 15 Atmosphären existieren, während in reinem Sauerstoff das Druckminimum noch bedeutend niedriger liegt, dafür aber auch bereits ein Druck von drei Atmosphären tödlich wirkt. Ueberhaupt geht aus den Versuchen von PAUL BERT hervor, daß die Wirkungen eines zu geringen Prozentgehalts durch Erhöhung des Druckes, und die Wirkungen eines zu hohen Druckes durch eine Herabsetzung des Prozentgehalts des Sauerstoffs innerhalb gewisser Grenzen kompensiert werden können.
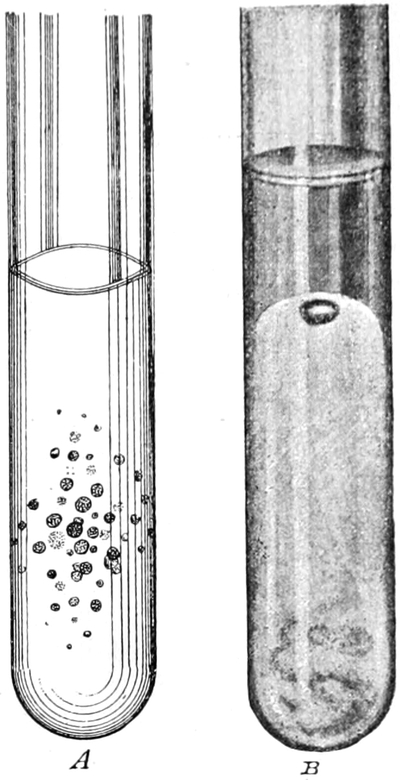
Fig. 145.
A
Rauschbrandbakterien-Kultur
. Nach M
IGULA
. Im Innern der Nährgelatine liegen, von der Luft abgeschlossen, die kugelförmigen Kolonien.
B
Tetanusbakterien-Kultur
. Die Bakterien haben den unteren Teil der Nährgelatine im Reagenzröhrchen verflüssigt und eine Gasblase gebildet, die sich am oberen Ende der verflüssigten Masse befindet. Die Bakterien sind nur im unteren, von der Luft durch eine dicke Gelatineschicht getrennten Teile des Reagenzröhrchens gewachsen.
Als sehr merkwürdig mußte früher die Tatsache gelten, daß Säugetiere in reinem Sauerstoff bei einem Druck von nicht mehr als drei Atmosphären zugrunde gehen, und noch seltsamer mußte die Angabe von PAUL BERT anmuten, daß das unter Erstickungssymptomen geschieht. PFLÜGER[269] suchte diese Beobachtungen nun dadurch plausibel zu machen, daß er auf ein analoges Verhalten des Phosphors hinwies, der in atmosphärischer Luft sich unter Bildung von phosphoriger Säure mit dem Sauerstoff der Luft verbindet, der sich aber in einer Atmosphäre von reinem Sauerstoff nicht oxydiert. In Wirklichkeit liegen, wie wir heute wissen, die Verhältnisse indessen ganz anders. Die Tiere gehen unter den angegebenen Bedingungen nicht, wie PAUL BERT dachte, an Erstickung zugrunde, sondern an Vergiftung, und zwar an Vergiftung mit Sauerstoff. Eine große Reihe von Erfahrungen hat nämlich gezeigt, daß Sauerstoff, wenn er in zu großer Menge einwirkt, ebenso ein Gift für den Organismus ist wie irgendein anderer giftiger Stoff. Die Grenze der Konzentration liegt nur für die verschiedenen Organismen sehr verschieden hoch, je nach den Lebensbedingungen, an die sie angepaßt sind. So liegt sie bei den Säugetieren sehr hoch und wird erst erreicht in reinem Sauerstoff bei Erhöhung des Druckes auf drei Atmosphären. Bei dem Infusorium Spirostomum liegt sie, wie PÜTTER[270] gezeigt hat, bereits viel niedriger. Diese Infusorien sind durchaus aerobe Organismen, d. h. sie gehen zugrunde, wenn man ihnen den Sauerstoff in ihrer Kulturflüssigkeit entzieht, und es müssen wenigstens 7–8 Proz. Sauerstoff ihnen zur Verfügung stehen, wenn man sie am Leben erhalten will. Aber schon bei 21 Proz. Sauerstoff zeigen sie nach 1–2 Stunden Lähmungssymptome, und je höher man den Prozentgehalt steigert, um so schneller gehen sie zugrunde. Ganz analog verhalten sich, wie WINOGRADSKY[271] gefunden hat, die Schwefelbakterien oder Beggiatoen, die ebenfalls schon durch den Sauerstoffgehalt der Luft geschädigt werden und im offenen Tropfen an der Luft nie länger als einige Tage am Leben bleiben. Sie halten sich infolgedessen in ihren Wassertümpeln auch immer einige Millimeter unter der Wasseroberfläche. Auf der anderen Seite kann Beggiatoa aber auch wiederum nicht ganz ohne Sauerstoff leben, ist also ein aerobes Bakterium. Unter den Bakterien finden wir nun auch alle möglichen Stufen der Abhängigkeit vom Sauerstoff vertreten bis herab zu den obligaten Anaeroben. So finden wir bei ihnen außer den Aeroben von allen Stufen des Sauerstoffbedarfs auch fakultativ anaerobe Formen, die sowohl ohne Sauerstoff als mit Sauerstoff leben können, wie z. B. die Choleravibrionen, die vollständig anaerob gezüchtet werden können, und denen ja auch im Darm kaum Spuren von Sauerstoff zur Verfügung stehen, die aber andrerseits, wenn ihnen Sauerstoff zur Verfügung steht, wie bei Kulturen im hängenden Tropfen, sich wieder als ungeheuer sauerstoffgierig erweisen. So finden sich schließlich unter dem großen Heere der Bakterien auch obligat anaerobe Formen, von denen die einen schneller, die anderen langsamer durch Sauerstoff geschädigt werden, und von denen die einen schon bei den kleinsten Spuren, die anderen erst bei etwas größeren Mengen von Sauerstoff zugrunde gehen. Die Rauschbrandbazillen (Fig. 145 A), die Tetanusbazillen (Fig. 145 B) und die Bazillen des malignen Oedems zeigen verschiedenartige Grade der obligaten Anaerobiose.
Sehr hübsch kommt der verschiedene Grad des Sauerstoffbedarfs bei verschiedenen Formen einzelliger Organismen zum Ausdruck in den Ansammlungslinien, die sie in geringerer oder größerer Entfernung von Sauerstoffquellen bilden, und die von BEIJERINCK als Atmungslinien bezeichnet worden sind. Die sauerstoffgierigen Formen lagern sich dicht an die Sauerstoffquelle an, die an einen geringeren Sauerstoffgehalt angepaßten Formen in einiger Entfernung und die anaeroben Formen in größter Entfernung[272].
Wenden wir uns nun zu den speziellen Folgen der Sauerstoffentziehung in den Fällen obligater Aerobiose, so ist es klar, daß in allen diesen Fällen, also bei der ganz überwiegenden Mehrzahl aller Organismen, das Leben schließlich aufhört, wenn die Sauerstoffzufuhr unterbrochen wird. Es entwickelt sich dann der Vorgang, den wir als „Erstickung“ bezeichnen.
Die Erstickung tritt bei den verschiedenen Organismen und ebenso bei den verschiedenen Zellformen eines und desselben Organismus innerhalb sehr verschieden langer Zeit nach der Sauerstoffentziehung ein, ebenso wie auch bei Nahrungsentziehung die verschiedenen Zellformen in sehr verschieden langer Zeit zugrunde gehen. Immer aber erfolgt nach Sauerstoffentziehung die Erstickung unvergleichlich viel schneller als nach Nahrungsentziehung der Hungertod.
Am schnellsten ersticken die Warmblüter. Bei ihnen beginnen die Erstickungssymptome bereits wenige Minuten nach der Sauerstoffentziehung mit einer Lähmung der Zellen der Großhirnrinde: das Bewußtsein schwindet. Der Symptomenkomplex, der sich dann rapide weiter entwickelt, zeigt zuerst starke Erregungsvorgänge im Gebiete des verlängerten Markes. So wird das Atemzentrum immer mehr erregt: die Atmung wird tiefer, die akzessorischen Atemmuskeln treten mit in Tätigkeit, bald ist die Atmung bis zum Maximum forciert. Vom Atemzentrum breitet sich die Erregung über das ganze motorische Sammelzentrum des verlängerten Markes aus, das sämtliche Körpermuskeln versorgt: es brechen klonische Krämpfe aus, die den ganzen Körper schütteln, die sogenannten TENNER-KUSSMAULschen Erstickungskrämpfe. Ferner ergreift die Erregung das Herzvaguszentrum, d. h. das Zentrum der Herzhemmungsnerven im verlängerten Mark: das Herz schlägt langsamer, die Pausen werden größer, schließlich bleibt es im diastolischen Zustande völlig erschlafft und mit Blut gefüllt stehen. Auch das Gefäßnervenzentrum des verlängerten Markes wird erregt und führt eine heftige Zusammenziehung der Blutgefäße herbei. Schließlich weicht die Erregung in allen diesen Zentren einer schnell fortschreitenden Lähmung, die bald zum völligen Stillstand aller von diesen Zentren aus versorgten Funktionen führt: die Atmung wird schnappend, flach, die einzelnen Atemzüge erfolgen in langen Pausen und hören schließlich ganz auf; die Krämpfe lassen nach und weichen allmählich einer Erschlaffung aller Muskeln; das Herz beginnt noch einmal zu schlagen, aber seine Schläge werden immer schwächer, bis es nach längerer Zeit still steht; nur die Gefäßmuskulatur bleibt kontrahiert, aber diese Kontraktion hat keinen zentralen Ursprung. So stirbt das Tier.
Viel weniger stürmisch ist der Verlauf der Erstickungssymptome bei kaltblütigen Wirbeltieren, z. B. bei Fröschen. Frösche können auch in einer vollkommen sauerstofffreien, reinen Stickstoffatmosphäre noch viele Stunden am Leben bleiben. An Fröschen sind in neuerer Zeit auch zahlreiche Versuche gemacht worden über die Erstickung einzelner Organe und Gewebe.
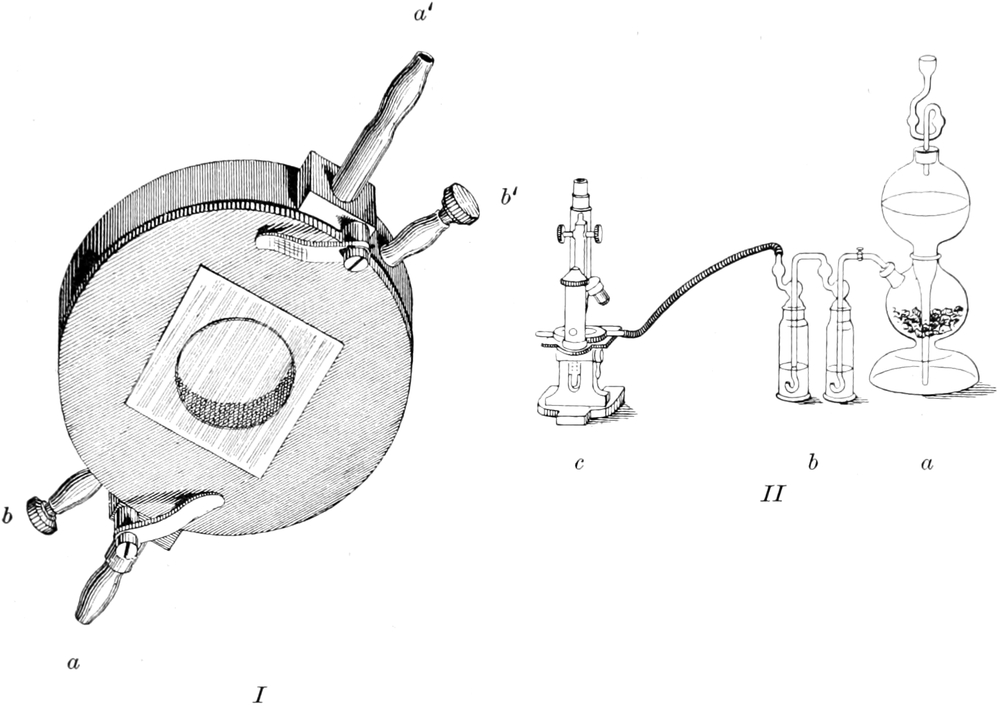
Fig. 146.
I
Engelmann
sche
Gaskammer
. Ein ringförmiger Hohlraum ist unten von einer Glasplatte geschlossen und oben mit einem Metalldeckel bedeckt, der in seiner Mitte ein Deckglas für die Untersuchung im hängenden Tropfen besitzt;
a
a′
sind Heizröhren, die in den Hohlraum des Ringes selbst münden, so daß der Ring durch durchströmendes warmes Wasser geheizt werden kann;
b
b′
sind Röhren, die in die glasbedeckte Kammer selbst einmünden und zum Hindurchleiten des Gases dienen, so daß der am Deckglas hängende Tropfen mit seinem lebendigen Inhalt in der Kammer vom Gase umspült wird.
II
Versuchsanordnung zur Untersuchung in reinem Wasserstoff
.
a
K
IPP
scher Apparat zur Wasserstoffentwicklung,
b
zwei Waschflaschen zur Reinigung des Wasserstoffs,
c
Mikroskop, unter dem sich die Gaskammer mit hängendem Tropfen befindet.
Wenn man bei einem Frosch das Blut durch eine sauerstofffreie Kochsalzlösung von 0,8 Proz. vollständig verdrängt, so daß den Zellen der Gewebe keine Spur von Sauerstoff mehr zugeführt wird, und daß statt des Blutes eine indifferente Kochsalzlösung in seinen Adern zirkuliert, so dauert es doch bei niedriger Außentemperatur einige Stunden, bis die Zellen des Zentralnervensystems vollständig unerregbar geworden sind. Führt man dann mit der Kochsalzlösung wieder eine gewisse Menge Sauerstoff in die Zirkulation ein, so ist in wenigen Minuten die Erregbarkeit wieder vollständig hergestellt[273]. Es ist das unter den Gewebezellen eins der besten Beispiele für die wichtige Rolle, die der Sauerstoff als Lebensbedingung spielt. Für den Nerven hat H. VON BAEYER[274] kürzlich die gleiche Tatsache nachgewiesen und FRÖHLICH hat dieselbe bestätigt und weiter verfolgt. In einer vollkommen reinen Stickstoffatmosphäre wird der Nerv, je nach der Temperatur, unter der das Tier in der letzten Zeit lebte, in etwa zwei bis acht Stunden nicht nur unerregbar, sondern auch leitungsunfähig. Bei der geringsten Zufuhr von Sauerstoff restituiert er sich aber schon innerhalb einer Minute bis zu seiner vollen Funktionsfähigkeit. Andere Zellformen von Geweben der Kaltblüter sind noch viel unabhängiger vom Sauerstoff und gehen erst nach langer Zeit an Sauerstoffmangel zugrunde. Macht man aber den Kaltblüter, z. B. den Frosch, künstlich zum Warmblüter, indem man ihn in einen Wärmekasten bringt und seine Temperatur erhöht, so erstickt er, wie WINTERSTEIN gezeigt hat, genau so wie der Warmblüter in einigen Minuten. Dazu genügen schon Temperaturen von etwa 30° C. Ja, WINTERSTEIN[275] fand, daß bei einer Temperatur von 33 bis 35° C die Zellen des Nervensystems bereits ohne Abschluß der Sauerstoffzufuhr unter heftigen Erregungssymptomen ersticken, weil die Sauerstoffversorgung der Zentra nicht mehr mit ihrem Sauerstoffbedarf gleichen Schritt halten kann. Ein auf diese Weise gelähmter Frosch erholt sich auch bei Abkühlung in einer sauerstofffreien Atmosphäre nicht wieder, sondern kann nur durch Zufuhr von neuem Sauerstoff nach Abkühlung wieder belebt werden.
Für einzellige, freilebende Organismen hat man ebenso wie für den Kaltblüternerven im reinen Stickstoff oder Wasserstoff ein bequemes Mittel, um den Sauerstoff vollständig auszuschließen, ohne andere schädigende Momente in den Versuch einzuführen. Man braucht zu diesem Zweck nur chemisch reinen Stickstoff oder Wasserstoff durch eine geschlossene Gaskammer zu leiten, wie sie am zweckmäßigsten ENGELMANN für mikroskopische Untersuchungen konstruiert hat (Fig. 146 I). In eine solche Gaskammer werden die zu untersuchenden Zellen in einem hängenden Tropfen des flüssigen Mediums, in dem sie leben, gesetzt und beobachtet. Durch eine Reihe von Versuchen hat KÜHNE[276] gezeigt, daß nach Verdrängung der Luft durch Wasserstoff Amöben erst nach etwa 24 Minuten allmählich ihre Bewegungen einstellen. Aus diesem Zustande können sie durch erneute Zufuhr von atmosphärischer Luft wieder zum Leben gebracht werden. Dagegen sterben sie, wenn sie einige Zeit länger unter Sauerstoffabschluß verweilen. Große Myxomycetenplasmodien stellen oft erst nach drei Stunden im sauerstofffreien Medium ihre Protoplasmabewegung ein und sterben noch später.
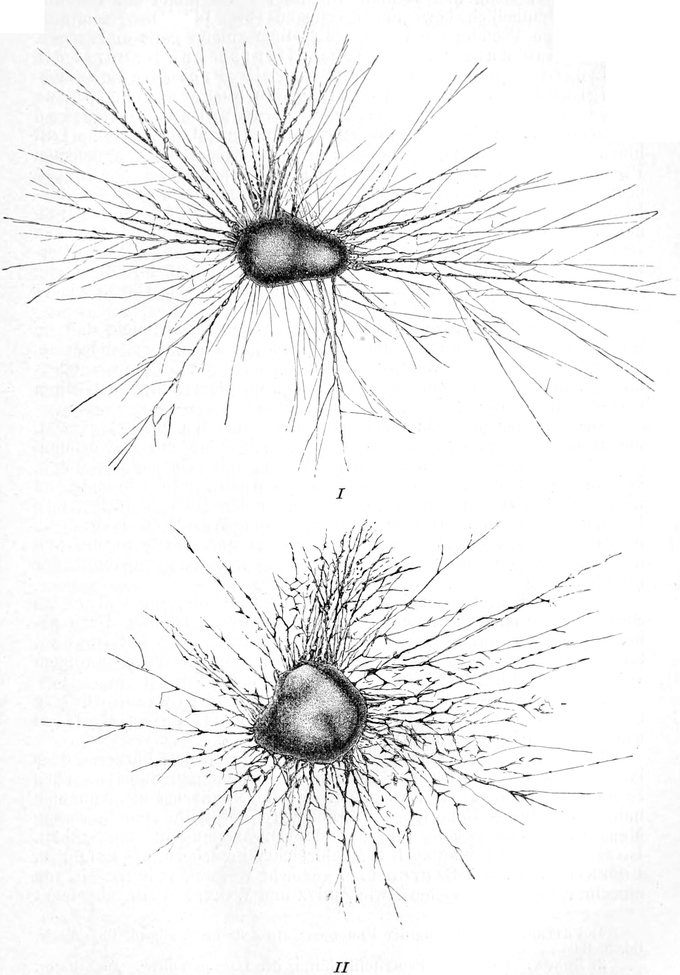
Fig. 147.
Rhizoplasma Kaiseri
.
I
Individuum in normalem Zustande mit ausgestreckten Pseudopodien und lebhafter Protoplasmaströmung.
II
Individuum mit Stillstand der Protoplasmabewegung nach Sauerstoffentziehung. Das Protoplasma bildet auf den Verzweigungsstellen der Pseudopodien kleine eckige Anhäufungen.
⇒ GRÖSSERES BILD
Für das Studium der Frage, in welcher Weise die beiden Phasen der Kontraktionsbewegungen, die Expansions- und die Kontraktionsphase, durch die Sauerstoffentziehung beeinflußt werden, sind die marinen Rhizopoden mit ihren langen Pseudopodien, an denen die Bewegung jedes Protoplasmateilchens auf eine sehr große Strecke hin ausgedehnt ist, die günstigsten Objekte[277]. Bringt man z. B. das Rhizoplasma Kaiseri, ein nacktes Rhizopod, aus dessen einkernigem, orangerotem Zellkörper nach allen Seiten hin dünne anastomosierende Pseudopodien mit ungemein lebhafter Protoplasmaströmung ausstrahlen (Fig. 147 I), in die ENGELMANNsche Gaskammer und leitet einen Wasserstoffstrom hindurch, so sieht man, daß erst nach 1½ bis 3 Stunden die Wirkungen der Sauerstoffentziehung bemerkbar werden. Die zentrifugale Protoplasmaströmung, die vorher sehr lebhaft war, so daß sich die Pseudopodien ausstreckten, wird schwächer und schwächer, bis sie schließlich ganz aufhört. Statt dessen besteht die zentripetale Strömung noch eine Zeitlang fort, so daß die Pseudopodien sich langsam verkürzen. Allmählich läßt aber auch die zentripetale Strömung mehr und mehr nach, und bald ist sie kaum noch bemerkbar. Das Protoplasma hat sich an den Verzweigungsstellen zu winzigen Anhäufungen gesammelt, die aber nicht kuglig und spindelförmig sind, wie bei stärkerer kontraktorischer Erregung, sondern mehr spitzig, eckig und zackig. In dieser Form bleibt das Rhizoplasma schließlich bewegungslos liegen (Fig. 147 II). Exemplare mit kürzeren Pseudopodien haben dieselben zuletzt ganz eingezogen. Es ist also durch die Sauerstoffentziehung zuerst die Expansionsphase (die zentrifugale Protoplasmaströmung) und dann erst allmählich die Kontraktionsphase (die zentripetale Protoplasmaströmung) zum Stillstand gekommen. Läßt man nunmehr von neuem atmosphärische Luft hinzu, so treten bereits nach fünf Minuten wieder die ersten neuen Pseudopodienspitzen aus dem zentralen Zellkörper hervor. Nach etwa zehn Minuten wird auch auf den alten Pseudopodien wieder eine lebhafte Strömung bemerkbar. Es kommt ein neuer Protoplasmastrom auf ihnen vom Zentrum her, und die kleinen Anhäufungen zerteilen sich, indem ihre Substanz teils zentripetal, teils zentrifugal weiterfließt. Auf diese Weise glätten sich die Pseudopodien, ihre Strömung wird lebhafter, und nach einer halben Stunde hat das Ganze wieder dasselbe Aussehen wie am Anfang des Versuchs.
Auch an Flimmerzellen konnte ENGELMANN feststellen, daß sie noch mehrere Stunden lang ohne Sauerstoff fortzuleben imstande sind, und für verschiedene Wimperinfusorienformen hat PÜTTER[278] ebenfalls ein längeres oder kürzeres Ueberleben im sauerstofffreien Medium nachweisen können.
Das gleiche hat schließlich HERMANN für den Muskel gezeigt, indem er von den beiden, vollständig gleichen Musculi gastrocnemii eines Frosches den einen in einen Zylinder mit reinem Wasserstoff, den anderen in einen Zylinder mit sauerstoffhaltiger Luft brachte und mittels elektrischer Reize, die gleichzeitig beide Muskeln trafen, ihre Erregbarkeit prüfte. Der Muskel im reinen Wasserstoff lebte noch mehrere Stunden bis zu einem Tage, ehe er unerregbar wurde, und der andere Muskel im Sauerstoff blieb stets nur wenige Stunden länger erregbar.
Schließlich gibt es auch aerobe Organismen, die länger als einige Stunden oder einen Tag ohne Sauerstoff existieren können. Dazu gehören besonders einige parasitär lebende Würmer. So hat BUNGE[279] Spulwürmer und PÜTTER[280] Blutegel mehrere Tage in einem völlig sauerstofffreien Medium am Leben erhalten.
Aus allen diesen Versuchen geht hervor, daß gewisse aerobe Zellen längere Zeit in einem sauerstofffreien Medium am Leben bleiben können.
Es entsteht nun aber die Frage, wie ein solches kürzeres oder längeres Ueberleben aerober Formen der lebendigen Substanz nach Sauerstoffentziehung zu denken ist. Es liegt zunächst die Annahme nahe, daß dieses Ueberleben möglich wird mit Hilfe einer gewissen Menge von Reservesauerstoff, den der Organismus in sich enthält. Diese Annahme ist denn auch von zahlreichen Forschern, wie PFLÜGER, ROSENTHAL, H. VON BAEYER u. a. gemacht worden, während sie von einzelnen anderen Forschern wie ZUNTZ und WINTERSTEIN, abgelehnt worden ist. Indessen wird man doch wohl kaum leugnen können, daß wenigstens in vielen Fällen eine gewisse, wenn auch immer nur verhältnismäßig geringe Menge von Sauerstoff in den Organismen aufgespeichert ist. Einen Fall, in dem wir das tatsächlich feststellen können, haben wir ja in den Wirbeltieren vor uns. Hier ist Sauerstoff, an Hämoglobin gebunden, auch noch nach äußerer Sauerstoffentziehung in Reserveform vorhanden. Beim Warmblüter ist diese Sauerstoffmenge wegen des intensiven Stoffwechsels der Gewebe allerdings in wenigen Minuten vollständig verbraucht, aber beim Kaltblüter, namentlich wenn sein Stoffwechsel bei niedriger Temperatur eine geringere Intensität hat, hält diese Reservemenge von Sauerstoff bedeutend länger vor. Es ist nun aber aus gewissen Erfahrungen sehr wahrscheinlich, daß, so wie hier im Blute, wenigstens bei vielen Kaltblütern, auch intrazellular kleine Reservemengen von Sauerstoff vorhanden sind, die bei äußerer Sauerstoffentziehung verbraucht werden. Immerhin würde es sich dabei — und das muß immer im Auge behalten werden — stets nur um verhältnismäßig kleine Mengen handeln gegenüber den großen Mengen von organischem Reservematerial, das jede Zelle aufgespeichert enthält. Für bestimmte Fälle, in denen die Erstickung erst mehrere Tage nach der Sauerstoffentziehung eintritt, würden daher diese kleinen Reservemengen von Sauerstoff unmöglich ausreichen, um das lange Ueberleben verständlich zu machen. Es bleibt daher nur die Annahme übrig, daß in allen Fällen, in denen nach völligem Aufbrauchen alles zur Verfügung stehenden Sauerstoffs das Leben dennoch eine Zeitlang bestehen bleibt, ein Stoffwechsel ohne Sauerstoff stattfindet, also ein Stoffwechsel, in dem die Dissimilationsphase nicht wie unter normalen Verhältnissen bei aeroben Organismen im wesentlichen in oxydativen Spaltungen besteht, sondern in Spaltungsvorgängen anderer Art. In der Tat hat PÜTTER (l. c.) bei Untersuchungen über den Stoffwechsel des Blutegels feststellen können, daß, während bei diesem Tier von dem gesamten Energieumsatz im Falle der Sauerstoffzufuhr 60 Proz. durch oxydative Spaltungen, 10 Proz. durch hydrolytische und 30 Proz. durch Spaltungsprozesse anderer Art bestritten werden, demgegenüber im Falle der Sauerstoffentziehung die oxydativen Spaltungen überhaupt keine Rolle mehr spielen, dagegen der ganze Energieumsatz zu 10–20 Proz. durch hydrolytische und zu 80–90 Proz. durch andere Spaltungsprozesse gedeckt wird.
Es fragt sich aber nun schließlich noch, warum das Leben dann bei diesen Organismen nach Sauerstoffentziehung nicht dauernd durch solche nicht oxydative Spaltungsvorgänge unterhalten werden kann, wenn genügende Nahrungsmengen zur Verfügung stehen, denn es ist eine allgemeine Tatsache: Bei Sauerstoffentziehung gehen die obligat aeroben Organismen nach kürzerer oder längerer Zeit schließlich unter Lähmungssymptomen ausnahmslos zugrunde. Die Antwort auf diese Frage ist offenbar die, daß bei allen obligat aeroben Organismen nach Sauerstoffentziehung durch die nicht oxydativen Spaltungsprozesse Stoffe gebildet und angehäuft werden, die allmählich lähmend und vergiftend auf die lebendige Substanz wirken, weil sie nicht in dem Maße ausgeschieden werden können, wie sie entstehen. Sie können aber höchstwahrscheinlich nicht in dem Maße ausgeschieden werden, weil sie in dieser Form überhaupt schwer ausscheidbar sind, da sie nicht bis zu leicht ausscheidbaren Stoffen wie Kohlensäure, Wasser und Ammoniakverbindungen gespalten sind. Wahrscheinlich handelt es sich dabei um komplexe stickstoffhaltige Spaltungsprodukte des Eiweißes. Daß aber in anderen Fällen solche lähmenden Stoffwechselprodukte sich nach Sauerstoffentziehung offenbar nicht anhäufen, zeigen die fakultativ anaeroben Organismen, die bei Sauerstoffzufuhr einen aeroben Stoffwechsel mit oxydativen Spaltungen haben, bei Sauerstoffentziehung dagegen dauernd aerob auf Kosten anderer Spaltungsprozesse zu leben vermögen.
Damit ist nun allerdings nicht gesagt, daß die Lähmung, die bei der Erstickung aller obligat aeroben Organismen schließlich eintritt, immer nur allein auf einer Vergiftung durch schwer ausscheidbare Produkte des aeroben Stoffwechsels beruht. Es ist vielmehr nicht unwahrscheinlich, daß im allgemeinen die Abnahme der Erregbarkeit bei Sauerstoffentziehung zum Teil auch auf den Fortfall der oxydativen Spaltungen zurückzuführen ist, die ja die größte Energieentwicklung liefern, da bei ihnen ein großes labiles Molekül sofort bis zu den einfachsten energiefreien Endprodukten wie Kohlensäure und Wasser zerfällt. Wie groß aber der relative Anteil beider Komponenten an dem Verlust der Erregbarkeit, d. h. an der Lähmung bei der Erstickung ist, läßt sich vorläufig gar nicht entscheiden. Es ist sehr wahrscheinlich, daß er bei verschiedenen Formen der lebendigen Substanz sehr verschieden sein wird.
Auf jeden Fall dürfen wir nicht vergessen, daß die verschiedenen Formen der Anaerobiose und die sehr verschieden entwickelte Fähigkeit verschiedener Organismen zum anaeroben Leben so einseitige Anpassungen an ganz spezielle Lebensbedingungen vorstellen, daß wir sehr vorsichtig sein müssen, wenn wir aus den Erfahrungen über den anaeroben Stoffwechsel Schlüsse ziehen wollen auf den aeroben Stoffwechsel und vor allem, daß wir uns hüten müssen, einzelne Tatsachen, die im anaeroben Stoffwechsel beobachtet werden, zu verallgemeinern. Was uns die Untersuchungen über den anaeroben Stoffwechsel gelehrt haben, ist in erster Linie die wichtige Tatsache, daß es bezüglich der Prinzipien des Stoffwechsels nicht die allgemeine Einheitlichkeit in der Organismenwelt gibt, die wir uns früher dachten, als wir, die Erfahrungen an den Wirbeltieren verallgemeinernd, noch glaubten, daß die Sauerstoffatmung ein allgemeiner Teilprozeß alles Stoffwechsels und die Sauerstoffzufuhr eine allgemeine Lebensbedingung sei.
4. Die Temperatur.
Außer den Bedingungen der Stoffzufuhr, von denen der Stoffwechsel unmittelbar abhängig ist, müssen noch andere Bedingungen erfüllt sein, wenn Leben dauernd bestehen soll. Dazu gehört vor allen Dingen eine Temperatur innerhalb gewisser Grenzen.
Es ist bekannt, daß die chemischen Prozesse in hohem Grade unter dem Einfluß der Temperatur stehen. Hohe Temperaturen führen im allgemeinen zur Dissoziation von Verbindungen, die sich bei niederen Temperaturen nur sehr langsam zersetzen. Die Wärme wirkt bei chemischen Prozessen immer als Beschleuniger. Die lebendige Substanz ist ein Gemisch von zahlreichen chemischen Stoffen, unter denen sich sehr komplizierte Verbindungen in sehr labilem Zustande befinden. Es liegt also auf der Hand, daß auch die lebendige Substanz in hohem Grade von der Temperatur abhängig sein muß, und daß das Leben nur innerhalb bestimmter Temperaturgrenzen bestehen kann. Diese Temperaturgrenzen, das Temperaturminimum und das Temperaturmaximum, sind freilich für die verschiedenen Formen der lebendigen Substanz durchaus verschieden. Temperaturen, bei denen die einen gedeihen, sind für andere Organismen schon tödlich. Aber es interessiert uns hier nicht, für die einzelnen Organismenformen die obere und untere Temperaturgrenze festzustellen, sondern es kommt uns allein darauf an, zu prüfen, welches das Temperaturminimum und -maximum ist, bei dem überhaupt noch Leben auf der Erdoberfläche existieren kann.
Es ist vielfach schon die Beobachtung gemacht worden, daß poikilotherme Tiere und Pflanzen einfrieren können, ohne ihre Lebensfähigkeit dadurch zu verlieren. So sah JOHN FRANKLIN auf seiner Polarreise im Jahre 1820 Karpfen, nachdem sie steinhart gefroren waren, beim Erwärmen am Feuer wieder lebendig werden und umherspringen, obwohl an den geschlachteten Exemplaren die Eingeweide so fest waren, daß sie als ein einziges Stück entfernt werden konnten. Ebenso brachte DUMERIL Frösche, die in kalter Luft von −4° bis −12° hart gefroren waren, durch vorsichtiges Erwärmen wieder zum Leben, und auch PREYER[281], der eine Reihe diesbezüglicher Angaben gesammelt hat, machte die Beobachtung, daß festgefrorene Frösche, wenn ihre Innentemperatur −2,5° C nicht erreicht hatte, wieder belebt werden konnten. Aehnliche Beobachtungen konnte ROMANES an Medusen (Aurelia aurita) machen, deren weicher, gallertartiger Körper von lauter feinen Eiskristallen durchschossen war. Allein, alle diese Angaben sind mit einiger Kritik aufzufassen. Zweifellos ist wohl die Tatsache, daß alle diese Tiere wirklich fest in Eis einfrieren und dennoch nach vorsichtigem Auftauen wieder ins Leben zurückkehren können; aber bei allen diesen Beobachtungen ist es nicht entschieden, ob die lebendige Substanz der Zellen selbst eine Temperatur unter 0° C besitzt. Bekanntlich produzieren alle Zellen eine gewisse Menge Wärme durch ihren Stoffwechsel, und ihre Innentemperatur könnte, wenn sie eingefroren sind, infolgedessen bei kürzerem Einfrieren um ein geringes höher sein als die des umgebenden Eises. Es wäre daher möglich, daß in allen diesen Beobachtungen die lebendige Substanz der Zellen selbst gar nicht eine Abkühlung auf 0° oder unter 0° C erfahren hätte. Es bedurfte also genauerer Untersuchungen, um die Frage zu entscheiden, ob die lebendige Zelle selbst eine Abkühlung ihrer Substanz bis auf oder unter 0° C ohne Schaden erträgt. Derartige Versuche hat zuerst KÜHNE angestellt.
KÜHNE[282] setzte in einem Uhrschälchen einen Tropfen Wasser, in dem sich viele Amöben befanden, auf Eis und fand, daß allmählich, entsprechend der Abkühlung, die Bewegungen der Amöben langsamer und langsamer wurden, bis sie schließlich ganz aufhörten und die Amöben vollständig regungslos liegen blieben. Wurde der Tropfen dann wieder auf gewöhnliche Zimmertemperatur gebracht, so stellten sich die Bewegungen wieder ein. Die Amöben waren also am Leben geblieben. Anders aber gestaltete sich der Erfolg, wenn KÜHNE den Tropfen mit den Amöben selbst einfrieren ließ. Alsdann blieben die Amöben auch nach dem Erwärmen regungslos und waren nicht mehr ins Leben zurückzurufen.
Sehr eingehende Versuche stellte in neuerer Zeit KOCHS[283] an Fröschen und Wasserkäfern an. Er ließ diese Tiere in Gläsern mit Wasser einfrieren. Dabei blieb aber, wenn die Temperatur nicht sehr niedrig war, um die Tiere herum, rings vom Eise umschlossen, eine flüssige Wassermasse, deren Temperatur, wie sich nach Durchbohrung der Eismasse zeigte, 2° über dem Nullpunkt war. Fror auch diese letzte Wasserschicht nach der Anbohrung noch ein, so konnten die Tiere noch durch Erwärmen zum Leben gebracht werden, wenn sie nicht länger als 5–6 Stunden eingefroren waren. Bei dem Durchsägen derartiger Präparate stellte sich aber heraus, daß die Tiere innen noch nicht hart gefroren waren. Wurde der Versuch dagegen so weit ausgedehnt, daß auch das Innere der Tiere hart gefroren war, was eintrat, wenn sie in kalte Luft von −4° C gebracht wurden, so waren alle Wiederbelebungsversuche vergeblich.
Die umfassendsten und an interessanten Ergebnissen reichsten Experimente hat kürzlich BACHMETJEW[284] an Schmetterlingen angestellt, indem er sich der thermoelektrischen Methode für die Temperaturmessung der Körperbestandteile bediente. Es hat sich bei seinen Versuchen ergeben, daß sich die Körpersäfte der Schmetterlinge ähnlich verhalten wie gewisse Flüssigkeiten, die unter ihren normalen Erstarrungspunkt bis zu einem bestimmten Temperaturgrade durch langsame Temperaturerniedrigung in flüssigem Zustande abgekühlt werden können, ohne zu erstarren. Erst wenn die „Unterkühlung“ einen bestimmten Temperaturgrad, den „kritischen Punkt“, erreicht hat, tritt die Erstarrung ein, und zwar unter dem Vorgange des sogenannten „Temperatursprunges“, d. h. einer plötzlichen Temperaturerhöhung. Auf diese Weise können die Schmetterlinge eine beträchtliche Temperaturerniedrigung ertragen, ohne daß ihre Körpersäfte gefrieren. Aber auch vollständig erstarrte Schmetterlinge konnte BACHMETJEW durch Erhöhung der Temperatur wieder beleben. Bezüglich der großen Fülle von interessanten Einzelheiten, welche die Untersuchungen von BACHMETJEW ergeben haben, muß auf die Originalarbeiten verwiesen werden.
Allen früheren Erfahrungen hat aber vor einiger Zeit RAOUL PICTET[285] Tatsachen hinzugefügt, nach denen wir, wie es scheint, nunmehr unsere Vorstellungen ganz verändern müssen.
Der bekannte Forscher, der uns bereits früher mit einer Anzahl außerordentlich wertvoller Entdeckungen über die chemischen Wirkungen der niedrigsten Temperaturen überrascht hat, stellte vor einigen Jahren in seinem Laboratorium Versuche an über die physiologische Wirkung extrem niedriger Temperaturen. Die Versuchsobjekte wurden durch Holz vor der Berührung mit den Metallwänden des Kältegefäßes, in das sie gebracht wurden, geschützt, so daß sie nur der niedrigen Lufttemperatur ausgesetzt waren. Dabei zeigte sich, daß sich die verschiedenen Tiere sehr verschieden verhielten. Fische, die in einem Eisblock auf −15° C abgekühlt wurden, blieben nach vorsichtiger Erwärmung dennoch am Leben, obwohl ihre Versuchsgenossen sich wie das Eis selbst zu Pulver zerstampfen ließen. Dagegen gingen die Fische bei einer Abkühlung auf −20° C zugrunde. Frösche ertrugen eine Temperatur von −28° C, Tausendfüßer von −50° C und Schnecken sogar von −120° C, ohne zu sterben; ja, Bakterien überstanden eine Temperatur von unter −200° C! Nach diesen überraschenden Versuchen dürfte es jetzt kaum noch zweifelhaft sein, daß die lebendige Substanz der Zellen selbst in einzelnen Fällen zu Eis gefrieren kann, ohne ihre Lebensfähigkeit einzubüßen.
In der Tat haben die Angaben RAOUL PICTETs durch die neuen und sehr gewissenhaften Versuche MACFADYENs[286] speziell für die Bakterien eine volle Bestätigung erfahren; ja, sie sind sogar noch übertroffen worden. MACFADYEN konnte feststellen, daß Kulturen von verschiedenen Bakterienarten, von den sehr hinfälligen Choleraspirillen an bis zu den sehr resistenten Milzbrandsporen, den Temperaturen flüssiger Luft von ca. −190° C 1–7 Tage ausgesetzt werden können, ohne ihre Lebensfähigkeit und Virulenz einzubüßen. Kulturen von Bacterium phosphorescens hören bei so niedrigen Temperaturen auf zu leuchten, beginnen aber sofort wieder mit ihrer Lichtentwicklung, wenn sie herausgenommen werden. Die Grenze, bei der die Lebensfähigkeit der Bakterienkulturen erlischt, konnte auch MACFADYEN nicht erreichen, obwohl er mit flüssigem Wasserstoff Temperaturen von −252° C erzielte. Aber auch bei dieser Temperatur, die nur noch 21° C über dem absoluten Nullpunkt liegt, wurde die Lebensfähigkeit der Bakterien trotz 10-stündiger Dauer des Versuchs in keiner Weise geschädigt.
An diese Tatsachen knüpfen sich verschiedene Fragen.
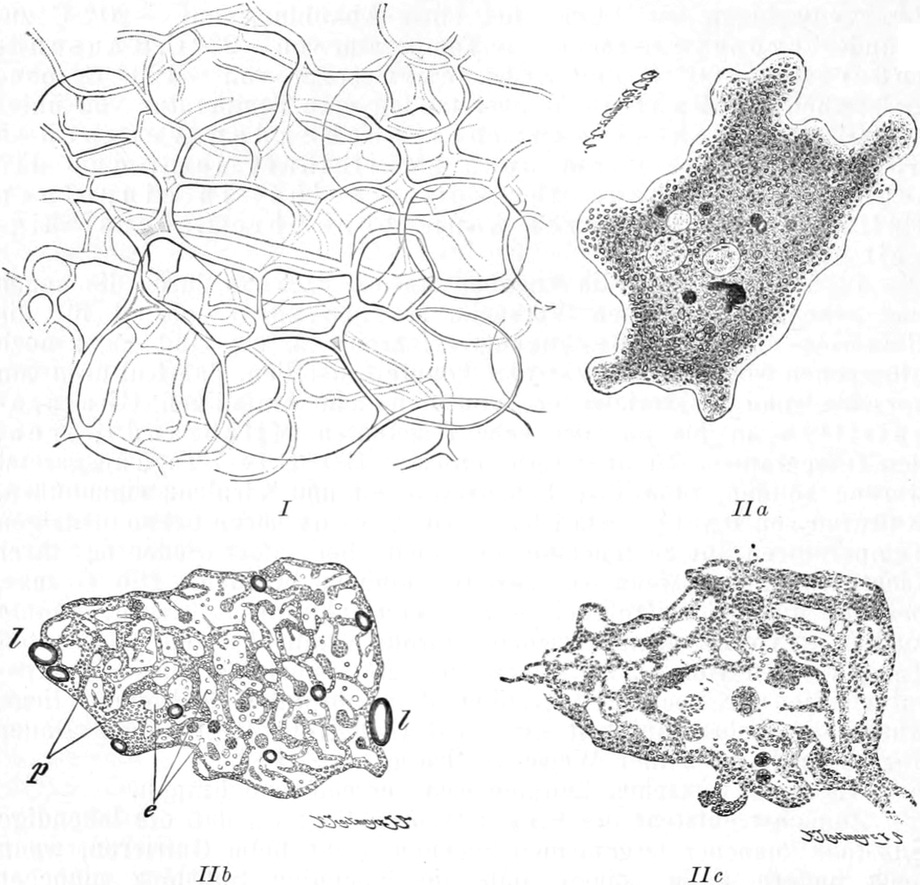
Fig. 148.
I
Wässerige 2-proz. Gelatinelösung
gefroren und sodann aufgetaut.
II
Amöbe
,
a
normal
,
b
eingefroren
. Innerhalb der Amöbe bildet sich an zahlreichen Punkten unter Abscheidung von Luftbläschen (
l
) Eis auf Kosten des Plasma- und Vakuolenwassers; dadurch wird das Plasma (
p
) samt seinen festen Einlagerungen zwischen die Eisklümpchen (
e
) als unregelmäßiges Gerüstwerk zusammengedrängt.
c
aufgetaut
. Die Amöbe zeigt deutlich die Lakunen, die vorher von Eis erfüllt waren, dazwischen das tote Plasmagerüst. Nach M
OLISCH
.
Zunächst entsteht die Frage: Woran liegt es, daß die lebendige Substanz mancher Organismen zugrunde geht beim Gefrieren, wenn doch andere Fälle zeigen, daß die lebendige Substanz mancher Organismen ohne Schaden einfrieren kann? Es sind von vornherein nicht ohne weiteres die näheren Bedingungen für den Tod in den ersteren Fällen zu ersehen. Dennoch haben die Bemühungen besonders der Botaniker in neuerer Zeit ein Verständnis in dieser Beziehung angebahnt. Durch die Untersuchungen von MOLISCH[287] ist es im höchsten Grade wahrscheinlich geworden, „daß der Gefriertod der Pflanze im wesentlichen auf einen zu großen, durch die Eisbildung hervorgerufenen Wasserverlust des Protoplasmas zurückzuführen ist“. Durch den Wasserverlust wird die chemische Struktur der spezifischen Verbindungen des Protoplasmas offenbar in vielen Fällen so weitgehend verändert, daß infolgedessen die Lebensfähigkeit dadurch vernichtet wird. Daß die verschiedenen Formen der lebendigen Substanz in sehr verschiedenem Grade durch den Wasserverlust beeinflußt werden, ist ja bekannt. Es braucht nur daran erinnert zu werden, daß die meisten Organismen beim Eintrocknen ihre Lebensfähigkeit verlieren, während andere dabei nur in den Zustand des Scheintodes übergehen (p. 153 u. ff.), ohne doch ihre Lebensfähigkeit einzubüßen. So wird es, wenn das Einfrieren durch Wasserentziehung wirkt, verständlich, daß die einen Organismen das Einfrieren vertragen, während die anderen dabei zugrunde gehen. Daß aber die Beschaffenheit organischer Verbindungen durch Einfrieren wesentlich verändert werden kann, geht z. B. aus den Versuchen von MOLISCH an Gelatine und Stärkelösungen hervor, die beim Einfrieren durch Entmischungsvorgänge eine ganz charakteristische Schwammstruktur annehmen (Fig. 148 I). Dabei haben sie durch den starken Wasserverlust ihr Klebevermögen verloren und gewinnen es erst nach Einwirkung höherer Temperatur allmählich wieder. Ganz ähnliche Strukturveränderungen zeigen Amöben nach dem Einfrieren (vergl. Fig. 148 II).
Eine andere Frage ist die, ob es sich in den eingefrorenen, aber lebensfähigen Organismen wirklich um einen völligen Stillstand der Lebensprozesse handle, eine Frage, die PREYER bejahen zu müssen glaubt. Theoretisch würde diese Annahme durchaus nichts gegen sich haben; denn wenn wir sehen, wie mit sinkender Temperatur die Energie der Lebensprozesse immer mehr abnimmt, dann ist es nicht ausgeschlossen, daß einmal ein Punkt erreicht wird, an dem die letzteren überhaupt aufhören. Die Möglichkeit, daß die Zellflüssigkeit selbst gefrieren kann, ohne daß die Lebensfähigkeit der Zelle dabei vernichtet wird, würde diese Annahme sogar noch unterstützen; denn wie wir sahen, kann das Leben ohne flüssiges Wasser nicht bestehen. Sobald also das flüssige Wasser in der lebendigen Substanz in den festen Zustand übergegangen ist, müßte man erwarten, daß auch die chemischen Umsetzungen in der Zelle stehen blieben. Eine Tatsache freilich, die, wenigstens auf den ersten Blick für gewisse Organismen der Annahme eines völligen Stillstandes Schwierigkeiten zu bereiten scheint, ist die von PICTET gemachte Beobachtung, daß Organismen, die zu Eis gefroren sind, gegen ein weiteres Sinken der Temperatur über einen bestimmten Punkt hinaus nicht mehr resistent bleiben. Sie sind nach dem Auftauen nicht mehr zum Leben zurückzurufen. Man könnte sagen: Stände bei diesen Organismen das Leben wirklich absolut still, so wäre es schwer zu verstehen, wie ein weiteres Sinken der Temperatur noch von Einfluß sein sollte. Indessen ein wirklicher Einwand gegen die Annahme eines völligen Stillstandes der Lebensvorgänge liegt hierin bei genauerem Zusehen doch nicht. Daß auch bei sehr niedrigen Temperaturen noch chemische Veränderungen auftreten können, wissen wir. Wenn also wirklich von einer gewissen Temperatur an abwärts die Lebensvorgänge stillstehen, so können doch durch weiteres Sinken der Temperatur sehr wohl noch andere chemische Vorgänge hervorgebracht werden, welche die Lebensfähigkeit der Zellen vernichten. Schließlich kann man sich doch angesichts der von PICTET und MACFADYEN für Bakterien erreichten ganz außerordentlich niedrigen Temperaturen kaum der Vorstellung verschließen, daß hier das Leben wirklich vollständig zum Stillstand gekommen sein muß. Allein, um mit Sicherheit diese Frage zu beantworten, fehlen uns doch bis jetzt noch die entscheidenden Experimente. Erst wenn sich herausstellen sollte, daß lebendige Substanz in gefrorenem Zustande jahrelang lebensfähig erhalten werden kann, wie sich gewisse Organismen in getrocknetem Zustande Jahre, Jahrzehnte, ja Jahrhunderte lebensfähig erhalten lassen, erst dann würde die Wahrscheinlichkeit, daß das Leben in den gefrorenen Organismen wirklich stillsteht, der Gewißheit nahekommen. Vorläufig fehlen diese Feststellungen noch. Wir müssen deshalb auf eine definitive Lösung der Frage nach dem absoluten Stillstand des Lebens in der Kälte vorläufig noch verzichten.
Auf ähnliche Schwierigkeiten wie die Feststellung des Minimums der äußeren Temperatur stößt auch die des Maximums. Das Maximum ist mindestens gegeben durch den Punkt, wo die Eiweißkörper in der lebendigen Substanz der Zelle gerinnen. Die Eiweißkörper spielen, wie wir wissen, im Leben der Zelle die wesentlichste Rolle, und es ist begreiflich, daß, wenn das gelöste Eiweiß in den festen Zustand übergeht, der Stoffwechsel, also das Leben, stillstehen muß. Hiernach könnte es sehr einfach scheinen, das Temperaturmaximum, bei dem noch Leben bestehen kann, zu ermitteln. Indessen ist einerseits die Gerinnungstemperatur für verschiedene Eiweißkörper eine sehr verschiedene, anderseits gibt es Berichte über Organismen, die selbst bei Temperaturen noch lebten, bei denen längst alles Eiweiß geronnen sein müßte.
KÜHNE[288] stellte in gleicher Weise wie über das Temperaturminimum auch über das Temperaturmaximum an Amöben Versuche an, bei denen er fand, daß sich die vorher lebhaft kriechenden Amöben bei einer Temperatur von 35° C kontrahierten, aber noch lebensfähig blieben, daß sie dagegen nach einer Erwärmung auf 40–45° C nicht mehr durch Abkühlung zum Leben zurückzurufen waren. Dabei konnte KÜHNE feststellen, daß ein Eiweißkörper der Amöbenzelle, den er für die kontraktile Substanz hält, bereits bei 40° C, ein anderer erst bei 45° C gerinnt. Für Pflanzenzellen ermittelte MAX SCHULTZE[289] eine Temperatur von 47° C als den Punkt, an dem der Tod eintrat. Demgegenüber haben verschiedene andere Autoren Angaben gemacht von merkwürdigen Fällen, in denen Organismen noch unter viel höheren Temperaturgraden existieren. Die wunderbarste Angabe war bisher immer die Beobachtung von EHRENBERG[290], der in den heißen Quellen von Ischia bei einer Temperatur von 81–85° C zwischen Filzen von Oscillarien ciliate Infusorien und Rädertierchen lebend antraf. HOPPE-SEYLER[291], der in Casamicciola auf Ischia diese Angabe EHRENBERGs einer Prüfung unterzog, fand freilich nur bedeutend niedrigere Temperaturen. Algen lebten, wenn sie heißen Dämpfen ausgesetzt waren, zwar bei 64,7° C, aber im Wasser betrug die höchste Temperatur, bei der sie existierten, nur 53° C.
Vor mehreren Jahren sind aber von neuem sehr eingehende Untersuchungen in Amerika an den heißen Quellen des Yellowstone-Park unternommen worden, bei denen wieder lebendige Algen unter viel höheren Temperaturen gefunden wurden. Die alte EHRENBERGsche Angabe scheint also doch nicht unrichtig gewesen zu sein.
Für einige Bakterienformen hat in neuester Zeit MACFADYEN[292] nachgewiesen, daß sie sehr hohe Temperaturen ertragen können. Es gibt „thermophile“ Bakterien, die das Optimum ihres Wachstums erst bei einer Temperatur von 50–65° C haben, und manche wachsen sogar in ihren Kulturen noch bei 72° C.
Sind diese Tatsachen schon wunderbar genug, so kennen wir doch noch eine sicher verbürgte, leicht zu beobachtende Tatsache, die auf den ersten Blick noch viel auffallender ist. Das ist das Verhalten gewisser Sporen von Bakterien gegenüber hohen Temperaturen. KOCH, BREFELD u. a. haben gezeigt, daß die Sporen des Milzbrandbacillus (Bacillus anthracis), sowie des Heubacillus (Bacillus subtilis) Temperaturen von mehr als 100° C ertragen können, ohne ihre Lebensfähigkeit einzubüßen.
Für diese rätselhaften Tatsachen fehlt uns vorläufig noch jede Erklärung. Wir können nur annehmen, daß in diesen Organismen die Eiweißkörper resp. Eiweißverbindungen sich wie trockenes Eiweiß in einem Zustande befinden, in dem sie durch hohe Temperaturen, ja, wie bei den Sporen der Heubazillen, selbst durch Siedehitze nicht zum Gerinnen gebracht werden können, denn die Annahme, daß die lebendige Substanz in diesen Organismen trotz der äußeren Hitze des umgebenden Mediums nicht bis zum Gerinnungspunkt des Eiweißes erwärmt werden sollte, ist selbstverständlich ausgeschlossen, und dasselbe gilt von der Annahme, daß die Lebensfähigkeit trotz der Gerinnung der Eiweißkörper in ihnen erhalten bleiben sollte. Wir wissen vorläufig noch nicht, in welchen molekularen Veränderungen das Wesen des Gerinnungsprozesses begründet ist, und von welchen Bedingungen sein Eintreten, abgesehen von den wenigen bekannten Faktoren, noch sonst beeinflußt wird. Erst wenn wir über diese Fragen besser unterrichtet sein werden, wird vermutlich auch einiges Licht auf die rätselhaften Tatsachen fallen, die wir eben kennen gelernt haben.
5. Der osmotische Druck.
Jede lebendige Zelle besitzt die Eigenschaften einer wässerigen Lösung von osmotisch wirksamen Stoffen, die durch eine semipermeable Membran nach außen abgeschlossen ist, sie hat also einen bestimmten osmotischen Druck und es ist wiederum ein interessantes Beispiel für die Bedeutung der physiologischen Forschung hinsichtlich der Entwicklung der physikalischen und chemischen Wissenschaft, daß die Grundlagen für die Entwicklung eines der wichtigsten Gebiete der heutigen physikalischen Chemie durch physiologische Untersuchungen über den osmotischen Druck der Zelle gelegt worden sind. Es ist das unvergängliche Verdienst unseres großen Pflanzenphysiologen PFEFFER[293], mit seinen Studien über die osmotischen Eigenschaften der Pflanzenzelle den Grund für die Theorie der Lösungen gelegt zu haben, die dann besonders VAN ’T HOFF in der physikalischen Chemie entwickelt hat.
Da die semipermeable Membran der Zelloberfläche stets für Wasser leicht durchgängig ist, für die im Zellinhalt gelösten osmotisch wirksamen Stoffe unter gewöhnlichen Verhältnissen gar nicht oder nur schwer, liegt es auf der Hand, daß der Wassergehalt der lebendigen Substanz in hohem Grade von den osmotischen Druckverhältnissen des Mediums abhängig sein muß, und da wiederum der Wassergehalt der lebendigen Substanz seinerseits in weitgehendem Maße durch Veränderung der Massenverhältnisse ihrer chemischen Inhaltsbestandteile den Ablauf der Lebensvorgänge in der lebendigen Substanz beherrscht, so ergibt sich daraus, eine wie große Bedeutung der osmotische Druck des umgebenden Mediums für die lebendige Zelle als Lebensbedingung besitzt.
Es ist allerdings eine Tatsache, daß sich gewisse Organismen von dem osmotischen Druck ihres Mediums innerhalb weiter Grenzen unabhängig gemacht haben. Dahin gehören in erster Linie selbstverständlich alle Landorganismen, ferner aber auch ein großer Teil der im Wasser lebenden Tiere, wie alle Wassersäugetiere, und ein Teil der im Meere lebenden niederen Wirbeltiere, wie Seeschildkröten und Knochenfische (Teleostier). Bei allen diesen Organismen ist mit Hilfe von regulatorischen Mechanismen, die ganz analog den Temperaturregulationsmechanismen der Warmblüter funktionieren, die Einrichtung getroffen, daß der osmotische Druck ihrer Zellen unabhängig von dem osmotischen Druck des Mediums immer auf gleicher Höhe erhalten wird. Wir müssen uns dabei erinnern, daß bei allen diesen Organismen ja die lebendigen Zellen des Körpers nicht in Berührung mit dem Medium stehen, in dem der betreffende Organismus lebt, sondern, daß das sie bespülende Medium die Körperflüssigkeit der betreffenden Organismen ist, also bei den Wirbeltieren Lymphe und Blut. Zwischen dem osmotischen Druck der Körperzellen und dem der Lymphe und des Blutes besteht immer Gleichgewicht, d. h. beide haben immer den gleichen Wert und dieser Wert erfährt infolge der regulatorischen Mechanismen immer nur ganz unbedeutende Schwankungen. Die eigentlichen lebendigen Bestandteile des Körpers, die Zellen, sind aber in sehr hohem Grade von dem osmotischen Druck der sie umspülenden Lymph- oder Blutflüssigkeit abhängig, denn spült man statt dieser normalen Körpersäfte eine künstliche Spülflüssigkeit von geringerem oder höherem osmotischem Druck durch ihre Gefäße, so sterben die Zellen des Körpers in kurzer Zeit ab. Die Unabhängigkeit der lebendigen Substanz dieser Organismen von dem osmotischen Druck des umgebenden Mediums ist also nur eine scheinbare oder indirekte. In Wirklichkeit ist jede lebendige Zelle durchaus abhängig im Ablauf ihrer Lebensprozesse von dem osmotischen Druck der Flüssigkeit, in der sie lebt. Es ist interessant, zu prüfen, wie verschieden der osmotische Druck der Gewebeflüssigkeiten bei verschiedenen Organismen sich gestaltet hat. Man kann den osmotischen Druck von Flüssigkeiten am besten durch Gefrierpunktsbestimmungen ermitteln. Durch die Anwesenheit von gelösten Stoffen wird der Gefrierpunkt des Wassers erniedrigt, und zwar hängt diese Erniedrigung des Gefrierpunktes ab von der Zahl der im Wasser gelösten Moleküle. So kann man also aus dem Grade der Gefrierpunktserniedrigung die Menge des gelösten Stoffes und damit den osmotischen Druck der Lösung bestimmen. Auf diese Weise ist z. B. festgestellt worden, daß das Blut des Menschen eine Gefrierpunktserniedrigung von rund 0,6° C zeigt, ein Wert, der nach KÖPPE[294] nur innerhalb sehr geringer Grenzen, nämlich innerhalb 0,51–0,61° schwankt. Das würde einem osmotischen Drucke entsprechen, der im mechanischen Druckwerte ausgedrückt etwa 7 Atmosphären beträgt und dieser Druck von rund 7 Atmosphären entspricht dem osmotischen Druck bei allen Säugetieren. Er ist gleich dem osmotischen Druck einer Kochsalzlösung von 1 Proz. Beim Frosch beträgt der osmotische Druck des Blutes nur etwa 4 Atmosphären, das ist gleich dem osmotischen Druck einer Kochsalzlösung von etwa 0,7 Proz. Wenn man also Organe, Gewebe oder Zellen vom Säugetier oder vom Frosch außerhalb ihres normalen Zusammenhanges mit dem Körper studieren will, so ist es nötig, sie in Flüssigkeiten zu halten, die nicht nur chemisch indifferent sind, sondern auch einen osmotischen Druck haben, der dem osmotischen Druck der Körpersäfte dieser Tiere entspricht. Im wesentlichen als chemisch indifferent können schwache Kochsalzlösungen betrachtet werden. Man bezeichnet daher für Säugetiergewebe eine etwa 1-proz., für Froschgewebe eine etwa 0,7–0,8-proz. Kochsalzlösung als „physiologische Kochsalzlösungen“. Natürlich müßten für jede Tierart mit anderem osmotischem Druck der Körpersäfte physiologische Kochsalzlösungen von anderem Prozentgehalt gewählt werden, wenn man ihre Zellen außerhalb des Körpers am Leben erhalten will. So hat BOTTAZZI[295] für die verschiedenartigsten Cölenteraten, Echinodermen, Würmer, Kephalopoden, Crustaceen etc. eine Gefrierpunktserniedrigung der Körpersäfte von rund 2,3° C gefunden. Das ist dieselbe Größe wie beim Meerwasser und entspricht einem Druck von etwa 28 Atmosphären. Man kann daher bei physiologischen Untersuchungen an isolierten Körperteilen dieser Tiere direkt Meerwasser als Medium benutzen, ein Umstand, der das Arbeiten an wirbellosen Meertieren so außerordentlich erleichtert.
Bei diesen letzteren Organismen, und wie es scheint, bei allen im Wasser lebenden Pflanzen und wirbellosen Tieren ist nun ein solches Regulationsvermögen des osmotischen Drucks der Körpersäfte nicht vorhanden. Bei ihnen verändert sich der osmotische Druck der Zellen mit den Schwankungen des osmotischen Drucks des Mediums. Da indessen in der Natur der osmotische Druck des Süß- oder Meerwassers im allgemeinen kaum oder nur in sehr geringen Grenzen Schwankungen erfährt, so wäre auch die Fähigkeit einer Regulation des osmotischen Drucks der Körpersäfte im Sinne etwa der Warmblüter von keiner besonderen Bedeutung für diese Organismen.
Im übrigen existiert bei vielen Organismen eine weitgehende Anpassungsfähigkeit an veränderte osmotische Druckverhältnisse des Mediums, das ihre Zelloberflächen berührt. Man kann z. B. viele einzellige Süßwasserorganismen in Seewasser bringen und umgekehrt, ohne daß sie zugrunde gehen. Es zeigen sich zwar unmittelbar nach der Ueberführung in ein Medium von anderem osmotischen Druck meistens Reizwirkungen, die aber nach einiger Zeit, wenn ein Ausgleich zwischen Medium und Zelle stattgefunden hat, wieder ganz verschwinden können. Bei Pflanzenzellen treten mit Erhöhung des osmotischen Drucks die bekannten Symptome der Plasmolyse auf[296]. Auch tierische Zellen schrumpfen unter diesen Bedingungen. Umgekehrt erfolgt eine Aufquellung bei Erniedrigung des osmotischen Druckes im Medium. Bei vielen Organismen ist die Anpassungsfähigkeit an Konzentrationsänderungen des Mediums enorm. So können z. B. Schimmelpilze der Gattung Mucor in konzentrierten Kupfersulfatlösungen gedeihen. Andererseits gelingt es z. B., Paramäcien, wie WALLENGREN[297] fand, durch allmähliche Ueberführung in destilliertes Wasser zu bringen und einige Zeit am Leben zu erhalten.
In der Regel aber gehen die Zellen bei etwas umfangreicheren Aenderungen in der Konzentration des Mediums zugrunde. Die Gewebezellen der höheren Tiere sind in dieser Beziehung ungeheuer hinfällig. Destilliertes Wasser tötet sie meist sofort. Rote Blutkörperchen in destilliertes Wasser gebracht, quellen ungeheuer stark auf, werden blaß und fast unsichtbar und zerfließen. In hypotonischen Lösungen dagegen gehen sie unter Schrumpfungssymptomen, die sich in der Annahme einer „Stechapfelform“ äußern, zugrunde. Die obere und untere Grenze des osmotischen Druckes, bei der das Leben erlischt, ist aber bei verschiedenen Zellformen sehr verschieden hoch gelegen und über die Extreme in dieser Beziehung läßt sich aus Mangel an ausgedehnten Erfahrungen vorläufig noch nichts weiter sagen.
6. Der mechanische Druck.
Wie die Temperatur und der osmotische Druck, so hat auch der mechanische Druck, unter dem die Körper stehen, einen Einfluß auf ihre chemische Konstitution. Dieser Einfluß macht sich besonders in gewissen Fällen bemerkbar, bei denen der chemische Körper in einem Medium sich befindet, mit dessen Stoffen er in chemischer Beziehung steht. Ist diese Bedingung erfüllt, befindet sich ein chemischer Körper in einem gasförmigen oder flüssigen Medium, das Stoffe enthält, die zu ihm chemische Affinität besitzen, so kann durch Erhöhung des mechanischen Drucks eine chemische Verbindung zwischen dem Körper und den betreffenden Stoffen des Mediums zustande kommen, durch Verminderung dagegen eine Spaltung in die früheren Bestandteile. Dieses Verhalten beruht auf dem Antagonismus zwischen den Wärmebewegungen der Moleküle resp. Atome im Molekül und dem mechanischen Druck. Bei einem höheren Druck werden die Moleküle resp. Atome im Molekül zusammengedrängt. Es können also mehr Moleküle und Atome miteinander in Berührung treten, während bei Aufhebung des Druckes die Wärmebewegungen der Moleküle und Atome wieder so groß werden, daß die Atome sich aus der lockeren Verbindung losreißen.
Die lebendige Substanz befindet sich in einem solchen Falle. Sie lebt in einem Medium, sei es Luft oder Wasser, mit dem sie in chemischem Stoffaustausch steht. Es ist also klar, daß der mechanische Druck, sei es der Luftdruck, sei es der Wasserdruck, eine große Bedeutung für das Leben haben wird, und daß ein mechanischer Druck innerhalb bestimmter Grenzen zu den allgemeinen Lebensbedingungen der lebendigen Körper gehören muß.
Leider ist gerade diese Lebensbedingung bisher noch am wenigsten erforscht, und es ist zurzeit erst zum Teil möglich, festzustellen, bei welchem Druck der Luft oder des Wassers überhaupt noch Leben existieren kann, zwischen welche Grenzen des Druckes das Leben auf der Erdoberfläche in seiner jetzigen Form eingeengt ist. Bei der experimentellen Erforschung dieser Probleme müßte aber wieder eingehend spezialisiert und es müßten die Werte für die einzelnen Konstituenten von Luft und Wasser, wie Sauerstoff, Kohlensäure etc. manometrisch gesondert bestimmt werden.
Wir haben bereits bei Besprechung des Sauerstoffes als einer wichtigen Lebensbedingung die Bedeutung des Partiardrucks dieses Gases kennen gelernt[298] und haben gesehen, daß reiner Sauerstoff bei einem Druck von mehr als 3 Atmosphären auf homoiotherme Tiere schon tödlich wirkt, während der gleiche Erfolg in gewöhnlicher Luft erst bei einem Druck von 15–20 Atmosphären eintritt. Ebenso erfolgt der Tod, wenn der Partiardruck des Sauerstoffes allzusehr sinkt.
Man hat das gewagte Experiment der Luftballonfahrt benutzt, um Erfahrungen darüber zu sammeln, bei welcher Höhe in der Atmosphäre der Luftdruck so gering wird, daß für den Menschen Lebensgefahr eintritt. Berühmt geworden ist die Luftballonfahrt, die SPINELLI, SIVEL und TISSANDIER im Jahre 1875 von Paris aus machten. Sie stiegen ziemlich schnell in die Höhe und erreichten ohne irgendwelche Störung eine Höhe von 7000 m. Bei etwa 7500 m dagegen, so erzählt TISSANDIER, fühlten sie eine immer mehr zunehmende Schwäche und Apathie, die sich bald zu vollständiger Bewegungslosigkeit steigerte, obwohl der Geist zunächst noch klar blieb. Die willkürlichen Bewegungen konnten sie nicht mehr ausführen und selbst die Zunge nicht mehr zum Sprechen benutzen. Als TISSANDIER dann die Beobachtung gemacht hatte, daß der Ballon eine Höhe von 8000 m überschritten hatte, verlor er nach vergeblichen Versuchen, seinen beiden Genossen diese Tatsache mitzuteilen, das Bewußtsein. Als er wieder erwachte, war der Ballon bis 7059 m gesunken. Darauf warf SPINELLI, der ebenfalls wieder erwacht war, Sand aus, um den Ballon nicht zu schnell fallen zu lassen. Infolgedessen stieg der Ballon wieder, und die Luftschiffer verloren von neuem ihr Bewußtsein. Als TISSANDIER darauf zum zweiten Male erwachte, waren sie bis zu 6000 m Höhe gesunken, und das Barometer zeigte an, daß der Ballon eine Höhe von etwa 8500 m erreicht hatte. Aber TISSANDIER war diesmal der einzige, der das Licht wieder erblicken sollte; seine beiden Gefährten erwachten nicht mehr.
Der Faktor, der ihren Tod bedingte, war hier der Sauerstoffmangel. Wird dieser Mangel korrigiert, so gelingt es dem Menschen ohne Verlust des Lebens sogar noch größere Höhen der Atmosphäre zu erreichen. Immerhin sind auch unter Benutzung aller Vorsichtsmaßregeln diese Untersuchungen gefahrvoll. Die größte Höhe, die bisher Menschen erreicht haben, sind 10500 m. Bis in diese Höhe gelangten BERSON und SÜRING bei ihrer Fahrt mit dem Ballon „Preußen“ am 31. Juli 1901. Da aus der Beschreibung der beiden Luftschiffer, die sehr genaue Beobachtungen an sich anstellten, eine große Uebereinstimmung mit den Erfahrungen TISSANDIERs sich ergibt, lasse ich ihre Beobachtungen mit ihren eigenen Worten hier kurz folgen[299]: „Bis gegen 9000 m war der Zustand relativ behaglich; jedoch machte sich zuweilen etwas Schlafbedürfnis geltend, das sich vollkommen ungezwungen durch die vorangegangene kurze Nachtruhe von kaum 3–4 Stunden und den ermüdenden Aufenthalt auf dem Ballonplatze seit 6 Uhr erklären läßt. Diese Müdigkeit ging jedoch allmählich in eine nicht unbedenkliche Apathie, in ein vorübergehendes unbeabsichtigtes Einschlummern über, von dem man sich allerdings durch Anruf oder Schütteln erweckt, sofort wieder völlig erholte, so daß alsdann die Beobachtungen mit etwas Ueberwindung, aber doch ohne besondere Anstrengung ausgeführt werden konnten. Das Einsaugen von Sauerstoff erwies sich zur vollen Belebung als ganz ausreichend. Irgendwelche schweren Bewußtseinsstörungen oder Krankheitssymptome traten bei beiden Insassen bis zur letzten Beobachtungsreihe in 10250 m Höhe nicht ein. Die Erschöpfung bei körperlicher Arbeit, z. B. dem Aufziehen des Uhrwerkes am Psychrometer, Aufsteigen auf den Sitzkasten des Korbes, oder dem Durchschneiden einer Leine nahm dagegen rapide zu. Ueber 10250 m sind die Vorgänge den Teilnehmern nicht mehr völlig klar. Jedenfalls zog Berson, als ihm der Schlafzustand bei SÜRING bedrohlich erschien, zweimal das Ventil und zwang dadurch den Ballon zum Abstieg, brach jedoch dann ohnmächtig zusammen. Vor oder nach diesem Ventilziehen versuchte auch SÜRING in lichten Augenblicken seinem schlafenden Kollegen durch verstärkte Sauerstoffatmung aufzuhelfen, aber vergebens. Schließlich werden vermutlich beide Insassen ihre Atmungsschläuche verloren haben und dann in eine schwere Ohnmacht gesunken sein, aus welcher sie ziemlich gleichzeitig bei etwa 6000 m wieder erwachten.“
Es ist kein Zweifel, daß auch hier wieder die beobachteten Vorgänge durch den sehr niedrigen Partiardruck des Sauerstoffs bedingt waren, der nicht in genügender Weise kompensiert wurde, denn es sind die typischen Anfangssymptome langsamer Erstickung, die den Zustand der Luftschiffer in der Nähe charakterisieren; die starke Apathie, die Unlust zu Bewegungen, die leichte Ermüdbarkeit und das Schwinden des Bewußtseins ohne besonders unangenehme Sensationen. Darin liegt das physiologische Interesse dieser beiden berühmten Luftreisen.
Für Pflanzen und Tiere kann man das Luftdruckminimum, bei dem sie eben noch am Leben bleiben, unter der Luftpumpe bestimmen, wobei es sich für die Tiere hauptsächlich um den Partiardruck des Sauerstoffs, für die Pflanzen um den der Kohlensäure handelt; doch liegen genauere Untersuchungen über diese Verhältnisse noch nicht in erwünschtem Maße vor.
Weit mehr Erfahrungen als über die unteren Grenzen des Luftdrucks, bei dem lebendige Körper existieren können, haben wir über dieselben Werte für den Wasserdruck.
Die Verminderung des Wasserdrucks um den Druck der auf dem Wasser lastenden Atmosphäre mittels der Luftpumpe scheint auf alle im Wasser lebenden Organismen an sich ohne Einfluß zu sein. Indessen ist eine weitgehende und andauernde Verminderung des Wasserdrucks nicht möglich, ohne den Gasgehalt des Wassers zu verändern. An dieser Stelle geht daher die Frage nach dem Minimum des Wasserdrucks in die Frage nach dem Minimum des Partiardrucks der darin enthaltenen Gase, vor allem des Sauerstoffs, über und knüpft wieder an die Frage nach der Bedeutung des Sauerstoffs als Lebensbedingung an.
Dagegen läßt sich wohl eine Wirkung der Druckerniedrigung beobachten bei Tieren, die im Wasser unter sehr hohem Druck zu leben gewöhnt sind.
Die interessanten Tiefseeforschungen der letzten Jahrzehnte haben gezeigt, daß, gegenüber früheren Vorstellungen, selbst in den größten Meerestiefen, wo ewiges Dunkel herrscht, und ein Druck von mehreren hundert Atmosphären auf den Körpern lastet, noch lebendige Organismen ein weltvergessenes Dasein führen. Der Druck, unter dem diese Tiere leben, ist so groß, daß z. B. Fische bei der plötzlichen Druckerniedrigung, die sie beim Heraufziehen erfahren, platzen. Sie kommen aufgebläht, mit abstehenden Schuppen und aus dem Maul herausgequollenen Eingeweiden an der Oberfläche an (Fig. 149), — eine Tatsache, die übrigens schon an den Fischen, welche in den Tiefen des Bodensees leben, beobachtet wird.
Fig. 149.
Neoscopelus macrolepidotus, aus 1500 m Tiefe an die Oberfläche gebracht
. Die Augen und die Eingeweide quellen hervor, und die Schuppen lösen sich durch die Ausdehnung der Haut vom Körper ab. Nach
Keller
.
Die eingehendsten und umfangreichsten Experimentaluntersuchungen über die Wirkungen sehr hohen Drucks hat REGNARD[300] angestellt. REGNARD führte mit einem Apparat, der es gestattete, Druckwerte bis zu 1000 Atmosphären zu erzeugen, ganz systematische Versuchsreihen an den verschiedenartigsten Organismen durch und studierte mit sorgfältigen Methoden das Verhalten der Lebensäußerungen unter diesen Bedingungen. Bei diesen Versuchen stellte sich heraus, daß z. B. Hefezellen unter einem Druck von mehr als 400 Atmosphären die Fähigkeit, Traubenzuckerlösungen zu vergären, einbüßen und erst allmählich wieder erlangen, einige Zeit nachdem sie unter gewöhnlichen Druck zurückgebracht worden sind. Aehnlich verhalten sich die Erreger der Milchsäure- und Buttersäuregäruug sowie die Fäulnisbakterien. Harn, Eier, Fleisch, Blut etc., die mit Fäulniserregern infiziert sind, zeigen bei einem Druck von 700 Atmosphären selbst nach mehreren Wochen keine Fäulnis, wenn die bei gewöhnlichem Druck aufgestellten Kontrollpräparate längst in Verwesung übergegangen sind. REGNARD ist daher geneigt, zu schließen, daß in sehr großen Meerestiefen keine Fäulnisprozesse stattfinden. Dagegen bleiben gelöste Fermente, also Enzyme, in ihrer Wirksamkeit selbst von den höchsten Druckwerten unberührt. Bei den Wimperinfusorien, wie Colpoda, Paramaecium, Vorticella etc., führt ein Druck von 600 Atmosphären schon in 10 Minuten zu vollständigem Stillstand der Wimperbewegung. Unter gewöhnlichen Druck zurückgebracht, nehmen die Infusorien erst nach 1 Stunde allmählich wieder ihre Wimpertätigkeit auf. Längerer Aufenthalt unter höherem Druck tötet die Infusorien. Bei größeren Organismen findet man ebenfalls unter hohem Druck einen Stillstand der Lebensäußerungen. Dabei bemerkt man zugleich, daß sie ihr Volumen ganz beträchtlich durch Wasseraufnahme in die Gewebezellen vergrößern. Aktinien z. B. zeigen nach einem einstündigen Aufenthalt unter einem Druck von 1000 Atmosphären ihr Volumen und ihr Gewicht verdoppelt. Nach der Herausnahme nimmt das Volumen allmählich wieder ab, und in 5–6 Stunden beginnt das Leben wieder zu erwachen; ja, ihre Lebensfähigkeit ist selbst nach einem 15-tägigen Aufenthalt unter so enormem Druck noch nicht verloren gegangen. Bei Würmern, Mollusken, Krebsen erhielt REGNARD analoge Resultate. Froschmuskeln zeigen nach einem Aufenthalt von 10 Minuten unter einem Druck von 600 Atmosphären zugleich mit einer Volumen- und Gewichtsvergrößerung durch Wasseraufnahme ebenfalls völlige Unerregbarkeit. Sie sind starr und steif geworden. Ihre Erregbarkeit erlischt bei einer allmählichen Steigerung des Druckes bereits bei 400 Atmosphären für die stärksten galvanischen Reizungen. Eine histologische Untersuchung der verschiedenen Gewebe von Fröschen, die unter hohem Druck waren, zeigt, daß das Protoplasma der Zellen überall durch Wasseraufnahme gequollen, ja in manchen Zellen, wie z. B. den Schleimzellen, völlig zerflossen ist. Bei Leuchttieren erlischt das Leuchten unter hohem Druck.
Es ist nicht möglich, alle die interessanten Einzelheiten, die REGNARD und seine Mitarbeiter feststellten, zu verzeichnen. Aus allen diesen Versuchen ergibt sich aber das eine, daß bei genügend hohem Druck die Lebensäußerungen bei allen bisher untersuchten Organismen erlöschen, und daß sie selbst nach kurzem Aufenthalt unter hohem Druck nur durch Zurückführung unter gewöhnliche Verhältnisse wieder in Gang gebracht werden können. Langer Aufenthalt unter sehr hohem Druck scheint stets zum Tode zu führen.
Ob es sich bei dem Erlöschen der Lebensäußerungen unter hohem Druck aber um einen absoluten Stillstand handelt oder nur um den Ausfall gewisser Prozesse resp. um eine vita minima, muß hier ebenso wie für die Kälte zunächst unentschieden bleiben.
B. Die allgemeinen inneren Lebensbedingungen.
Mit der Erfüllung der bisher besprochenen Bedingungen der Stoffzufuhr, bestimmter Temperaturgrade und eines gewissen Drucks ist die Reihe der allgemeinen Lebensbedingungen, welche im Medium gegeben sein müssen, erschöpft. Andere Bedingungen, wie z. B. das Licht, die ebenfalls noch äußere Lebensbedingungen sind, stellen keine allgemeinen Lebensbedingungen vor, sondern gelten nur für spezielle Organismen oder Organismengruppen.
Allein, zu den allgemeinen äußeren Lebensbedingungen gesellen sich noch andere, die erfüllt sein müssen, wenn Leben bestehen soll, die aber im Organismus selbst liegen. Das sind die allgemeinen inneren Lebensbedingungen.
Die selbstverständliche Hauptbedingung für die Existenz des Lebens neben der Erfüllung aller äußeren Lebensbedingungen ist die Anwesenheit lebensfähiger Substanz, an der die Lebensvorgänge sich abspielen können. Wenn wir uns daher ein winziges Tröpfchen lebendiger Substanz denken in einem Medium, in dem die äußeren Lebensbedingungen sämtlich erfüllt sind, so müßten wir annehmen, daß es dann am Leben bliebe, solange nicht von außen störende Momente hinzutreten. Aber dem widerspricht die Erfahrung durch das Experiment.
Wir können leicht eine kleine Menge lebendiger Substanz gewinnen, indem wir von einer lebendigen Zelle, etwa von einer Amöbe, unter dem Mikroskop mit einer feinen Lanzette ein winziges Stückchen des hyalinen Protoplasmas abschneiden. Das abgeschnittene Stückchen ist lebendig; das erkennen wir daran, daß es auch nach der Operation noch Lebensäußerungen zeigt. Die äußeren Lebensbedingungen ferner sind sämtlich erfüllt, denn es befindet sich in demselben Medium und unter denselben äußeren Verhältnissen wie die ganze Amöbe. Und dennoch dauert es nur kurze Zeit, dann ist das abgeschnittene Protoplasmatröpfchen tot und kann durch nichts mehr zum Leben zurückgeführt werden. Denselben Erfolg hat unfehlbar jedes gleiche Experiment an irgendeiner anderen Zelle. Hier haben wir also eine gewisse Menge lebendiger Substanz in einem Medium, in dem alle äußeren Lebensbedingungen erfüllt sind, und dennoch kann die Masse nicht dauernd am Leben bleiben. Es fehlt uns also noch ein Moment in der vollständigen Bestimmung aller allgemeinen Lebensbedingungen.
Unser Versuch zeigt uns dieses Moment: es ist der natürliche Zusammenhang und die Wechselwirkung der wesentlichen Teile eines Organismus, denn es existiert jetzt auf der ganzen Erde keine lebendige Substanz, die in allen ihren Punkten gleichartig wäre.
Das gilt vom Zellenstaat in gleicher Weise wie von der einzelnen Zelle. Zwar könnte man einwenden, daß man in vielen Fällen Teile, ja ganze Organe von einem Organismus abtrennen kann, ohne seine Existenz zu gefährden. Das ist richtig; aber in allen diesen Fällen handelt es sich immer nur um Teile, die nicht unbedingt zur Erhaltung des Individuums notwendig sind, sei es, weil sie in der Mehrzahl vorhanden sind und in ihrer Rolle durch andere vertreten werden können, sei es, weil sie mit den anderen Teilen nicht in engerer Wechselwirkung stehen und daher auch abgetrennt noch vollkommene Individuen vorstellen. Ein Polyp kann in zwei Teile geschnitten werden, die beide weiterleben, und von einem Polypenstock kann ein einzelner Polyp losgetrennt werden, ohne zugrunde zu gehen. In unserem Experiment an der Amöbe bleibt der kernhaltige Zellkörper auch nach Abtrennung eines Stückes Protoplasma noch am Leben, weil er noch eine größere Menge von ebensolchen Protoplasmateilchen besitzt. Dagegen geht das abgeschnittene Stück Protoplasma zugrunde, weil der Zusammenhang und die Wechselwirkung mit der Substanz des Zellkerns aufgehoben ist.
Fig. 150.
Stentor Roeselii, eine Wimperinfusorienzelle
. Die helle, langgestreckte, stabförmige Masse im Innern ist der Kern.
A
bei * in zwei kernhaltige Stücke zerschnitten;
B
und
C
, die kernhaltigen Stücke haben sich wieder zu ganzen Stentoren regeneriert und leben weiter.
Wir kennen die lebendige Substanz, die jetzt auf der Erdoberfläche existiert, nur in Form von Zellen, mögen die Zellen einzeln leben oder zu Zellenstaaten verbunden sein. Die Zelle aber enthält als allgemeine morphologische Bestandteile zwei verschiedene Substanzen, das Protoplasma und den Zellkern[301]. Wo noch ein wenig Protoplasma und ein wenig Kernsubstanz vereint existiert, da haben wir noch eine Zelle, und nur diese ist, wenn ihre äußeren Lebensbedingungen erfüllt sind, lebensfähig. Wir können daher auch eine große Zelle in viele lebensfähige Stücke teilen, solange wir nur darauf achten, daß jedes Stück etwas Protoplasma und ein wenig Kernsubstanz mitbekommt, und daß das Mißverhältnis zwischen beiden Massen eine bestimmte Größe nicht übersteigt[302]. Das Experiment ist bei einiger Geschicklichkeit an großen einzelligen Organismen gar nicht so schwer auszuführen (Fig. 150). Wird aber eine Zelle so geteilt, daß der Kern vom Protoplasma getrennt wird, so gehen beide Teile unfehlbar zugrunde.
Da die Zelle also der allgemeine Elementarbestandteil aller Organismen, das Individuum niedrigster Ordnung ist, so können wir als ganz allgemeine innere Lebensbedingung die Forderung des Zusammenhanges von Kern und Protoplasma in der Zelle aufstellen. Die Begriffe des Kerns und des Protoplasmas aber umfassen wiederum die ganze Fülle von Einzelbedingungen, die ihr Wesen charakterisieren und die wir oben bereits eingehender erörtert haben. Es gehört hierhin die Summe aller morphologischen, chemischen und physikalischen Momente, die für jeden speziellen Fall den Zellkern und das Protoplasma eindeutig bestimmen und die uns im einzelnen auch noch nicht annähernd vollständig bekannt sind. Alle diese Momente zusammen bilden die inneren Lebensbedingungen und sie finden nur ihren allgemeinen Sammelausdruck in den Begriffen „Protoplasma“ und „Zellkern“. Daher können wir ganz allgemein sagen: nur wo Kern und Protoplasma vereint sind, da kann Leben auf die Dauer existieren.
** *
Ein Vorgang in der leblosen Natur tritt ein, wenn bestimmte Bedingungen erfüllt sind, denn der Vorgang ist identisch mit der Summe seiner Bedingungen. Dasselbe gilt von den Lebensvorgängen. Die Lebensäußerungen treten mit mechanischer Notwendigkeit auf, wenn die sämtlichen inneren und äußeren allgemeinen und speziellen Lebensbedingungen erfüllt sind. Die Lebensäußerungen sind, so könnte man auch mit anderen Worten sagen Ausdruck der Wechselbeziehungen zwischen lebendiger Substanz und umgebendem Medium, oder wie CLAUDE BERNARD[303] sagt: „les manifestations vitales résultent d’un conflit entre deux facteurs: la substance organisée vivante et le milieu“.
Bei dieser konditionalen Auffassung des Lebensvorganges drängt sich die Frage auf: Wie war es um das Leben bestellt zu einer Zeit, zu der noch ganz andere Bedingungen auf unserem Weltkörper herrschten als jetzt? Konnte schon früher Leben bestehen? wann konnte es entstehen? und wie entstand es?
II. Die Herkunft des Lebens auf der Erde.
Es gab eine Zeit, zu der unser Erdball ein feuriger Körper war, seiner Mutter gleich, der Sonne, die jetzt noch unsere Tage mit den Strahlen ihrer glühenden Masse erwärmt und erhellt. Die härtesten Gesteine, die festesten Metalle, die heute die erstarrte Rinde unseres Erdkörpers zusammensetzen, befanden sich damals in einem feurig-flüssigen Zustande, und eine Atmosphäre von glühenden Gasen umgab den flüssigen Kern. Nach Tausenden von Graden maß die Temperatur in diesem glühenden Gemisch, in dem es in gewaltiger Bewegung durcheinanderwogte und wirbelte.
Die Vorstellung, daß unser Erdball einst einen solchen Zustand in seiner Entwicklung durchlaufen hat, ist jetzt ein unbestrittenes Allgemeingut aller einzelnen Zweige der Naturwissenschaften. Astronomie und Physik, Geologie und Entwicklungsgeschichte, Mineralogie und Chemie, alle treffen in diesem Punkte zusammen. In der Tat hat uns die moderne Forschung mit Hilfe des Fernrohrs und des Spektralapparates direkt vor Augen geführt, daß noch jetzt im Weltall überall sich derselbe Entwicklungsprozeß wiederholt, den unser Erdball einst durchgemacht hat, daß wir noch jetzt überall im Weltenraum an anderen Weltkörpern die analogen Zustände zu jedem einzelnen Entwicklungsstadium der Erde finden, vom gasförmigen Nebelfleck an durch die feurig-flüssige Kugel bis zur festen, in eisiger Kälte erstarrten Masse, dem Schicksal, das auch unserer Erde einst bevorsteht, und das uns unser treuer Gefährte, der Mond, täglich vor Augen hält.
Die Tatsache, daß unsere Erde sich einst in einem Zustande befand, in dem ihre Temperatur eine ungeheure war, in dem kein Tropfen Wasser existierte, kurz, in dem von den Lebensbedingungen, die wir heute als unerläßlich für die Existenz der Organismen kennen, keine Rede sein konnte, diese Tatsache wird immer ein wichtiges Moment sein, mit dem alle Spekulationen über die Herkunft des Lebens auf der Erde zu rechnen haben.
Betrachten wir hiernach die verschiedenen Ansichten, welche auf wissenschaftlicher Grundlage über die Herkunft des Lebens auf der Erde von verschiedenen Forschern geäußert worden sind, um uns danach selbst, wenn auch nur in allgemeinen Zügen, eine Vorstellung bilden zu können.
A. Die Theorien über die Herkunft des Lebens auf der Erde.
1. Die Lehre von der Urzeugung.
Der Inhalt der modernen Urzeugungslehre (Lehre von der Archigonie, Abiogenesis, Generatio spontanea oder aequivoca etc.) in seiner allgemeinen Form gipfelt in folgender Schlußfolgerung. Da es eine Zeit in der Entwicklung unseres Erdkörpers gab, zu der die Existenz der lebendigen Substanz, die jetzt die erkaltete Erdoberfläche bewohnt, schlechterdings unmöglich war, so muß die lebendige Substanz zu irgend einem späteren Zeitpunkt der Erdentwicklung einmal aus lebloser Substanz entstanden sein.
Es entsteht aber danach die Frage, wie die ersten Organismen beschaffen waren, und unter welchen Bedingungen sie entstanden.
Dem Altertum, ja selbst einem Geiste von so umfassender Naturkenntnis wie ARISTOTELES machte die Vorstellung, daß selbst Tiere, wie Würmer, Insekten, sogar Fische aus Schlamm entstehen könnten, keine besonderen Schwierigkeiten. Erst in verhältnismäßig später Zeit, besonders im Anschluß an die Untersuchungen von REDI und SWAMMERDAM über die Entwicklung der Insekten, ließ man diese naiven Urzeugungsideen als unvereinbar mit den festesten naturwissenschaftlichen Erfahrungen fallen.
Einen neuen Anhaltspunkt gewann die Lehre von der Urzeugung aber wieder, als die Erfindung des Mikroskops zur Entdeckung einer bis dahin völlig unbekannten, überaus formenreichen Welt führte, als man fand, daß in jedem Aufguß von Wasser auf eine tote organische Substanz nach kurzer Zeit eine Fülle von kleinen lebendigen Wesen sich entwickelte, die wir noch jetzt deshalb als Aufgußtierchen oder Infusorien bezeichnen. In den Infusorien glaubte man mit Sicherheit Organismen gefunden zu haben, die durch Urzeugung aus den toten Stoffen des Aufgusses sich bildeten. Das mußte um so mehr Wahrscheinlichkeit für sich haben, als die Infusorien gleichzeitig die niedrigsten und einfachsten Wesen waren, die man überhaupt bis dahin kannte. Allein, auch in diesem Falle stellte sich heraus, daß die Organismen nicht durch Urzeugung erst entständen, sondern sich entwickelten aus Keimen, die schon vorher in den Stoffgemischen enthalten waren oder durch die Luft in die Gefäße gelangten. MILNE EDWARDS, SCHWANN, MAX SCHULTZE, HELMHOLTZ u. a. zeigten nämlich, daß, wenn man die Substanzen durch Kochen vorher keimfrei gemacht hatte, und wenn man verhinderte, daß durch die Luft Keime in den Aufguß gelangen konnten, daß dann die Entwicklung von Infusorien stets unterblieb, man mochte den Aufguß stehen lassen, solange man wollte; ja, GEORG MEISSNER wies sogar nach, daß die verschiedensten tierischen Säfte, auch ohne künstlich vorher sterilisiert zu sein, wenn sie nur ohne Infektion direkt aus dem Tierkörper in sterilisierte Gefäße gebracht werden, selbst bei Zutritt von Luft, aber Abschluß der in der Luft enthaltenen Keime, vollständig steril bleiben[304].
Als schließlich in neuerer Zeit die kleinsten aller Mikroorganismen, die Bakterien, die Aufmerksamkeit der wissenschaftlichen Welt in hohem Maße auf sich zu lenken begannen, als man mit unseren verfeinerten Forschungsmethoden fand, daß diese winzigen Wesen oder ihre Keime überall in der Luft, in der Erde, im Wasser vorhanden sind, da bemächtigte sich die Urzeugungslehre auch dieser Organismen und ließ sie als die niedrigsten noch heute fortwährend aus leblosem Material entstehen. Aber auch hier hat die moderne Bakteriologie mit den bewunderungswürdig feinen Methoden, die sie ihren Begründern, vor allem PASTEUR und ROBERT KOCH, verdankt, die Urzeugungslehre zurückgewiesen, indem sie zeigte, daß unter Abschluß aller Keime, die von außen auf das Präparat gelangen könnten, selbst der fruchtbarste Nährboden, der alle Stoffe für die Ernährung der Bakterien in günstigster Mischung enthält, bakterienfrei bleibt, daß sich dagegen eine ganze Welt der verschiedensten Bakterienformen auf ihm entwickelt, sobald man ihn nur kurze Zeit offen an der Luft stehen läßt.
Mit diesem fortlaufenden Streit um die Urzeugungslehre Hand in Hand gingen die bis in die neueste Zeit reichenden Versuche, lebendige Organismen künstlich im Laboratorium herzustellen. In unserer Zeit sind diese Bemühungen besonders mit dem Namen POUCHETs verknüpft, der wohl der letzte zähe Vertreter der Ansicht war, daß es möglich sei, einzellige Organismen, wie Bakterienformen, Hefepilze und ähnliche Mikroben aus leblosen Substanzen künstlich zu erzeugen, indem man nur die notwendigen Bestandteile vermischt und unter günstige äußere Bedingungen bringt. Aber selbst wenn diese Versuche einmal zu positiven Resultaten geführt zu haben schienen, immer kamen wieder die Bakteriologen mit ihren kritischen Methoden und zeigten, daß es sich um die Entwicklung von Keimen handelte, die von außen dazu gekommen waren oder sich schon vorher in den Versuchsgefäßen befunden hatten. Diese Bemühungen, aus toten Stoffen künstlich lebendige Mikroben zu erzeugen, sind im Grunde genommen nichts anderes als das Unternehmen des Famulus WAGNER, den Menschen selbst in der Retorte aus chemischen Gemischen zusammenzusetzen. Wie kann man hoffen, auch nur den einfachsten Organismus chemisch herzustellen, wenn uns die chemische Zusammensetzung der wichtigsten Stoffe, aus denen alle lebendige Substanz besteht, die Zusammensetzung der lebenswichtigsten Eiweißverbindungen zurzeit noch so wenig bekannt ist!