Drittes Kapitel. Von den elementaren Lebensäußerungen. (continued 4)
Reading edition
Spontanes Leuchten finden wir viel weniger verbreitet. Es tritt uns besonders entgegen bei gewissen Fäulnisbakterien, die auf faulenden Seefischen und Fleisch leben (Bacterium phosphorescens), sowie bei Pilzen (Agaricus) und bei einzelnen Insekten (Elater, Lampyris etc.).
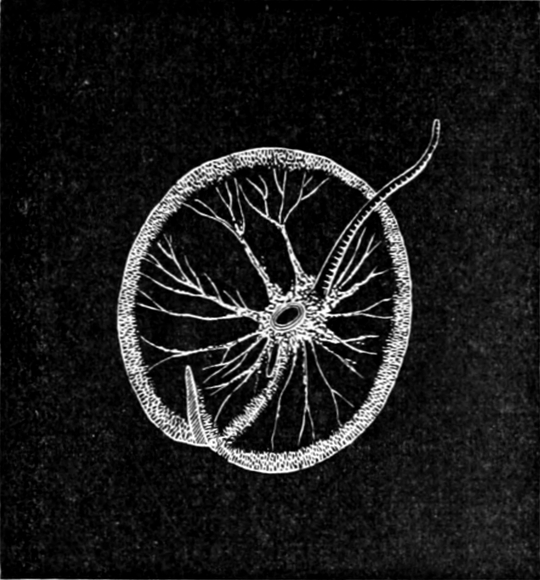
Fig. 126.
Noctiluca miliaris
, eine pelagisch lebende Geißelzelle, welche auf Reizung leuchtet.
Die wichtigste physikalische Eigentümlichkeit des Organismenlichtes ist, daß es ein kaltes Licht ist. Die Lichtproduktion der Organismen gehört also in die Gruppe der Lumineszenzvorgänge, und zwar speziell der Chemolumineszenz, wie sie bei gewissen chemischen Prozessen auftritt. Bezüglich der Spektralfarben des Lichtes liegen zahlreiche Untersuchungen vor, so z. B. von PANCERI und SECCHI an Salpen (Pyrosoma), von MOSELY an Tiefsee-Cölenteraten (Alcyonarien), und in neuerer Zeit besonders von LANGLEY und VERY[241] an dem Leuchtkäfer Pyrophorus noctilucus und von MOLISCH[242] an Bakterien. Um einen Vergleich des Insektenlichts mit dem Sonnenlicht zu gewinnen, entwarfen LANGLEY und VERY ein Spektrum des Lichts von Pyrophorus und ein Sonnenspektrum übereinander (Fig. 127). Dabei stellte sich heraus, daß bei gleicher Helligkeit beider Lichtarten das Sonnenspektrum sowohl weiter nach der violetten wie nach der roten Seite hinüberreicht als das Licht des Pyrophorus, daß dagegen das Licht des Käfers im Grün intensiver ist als das Sonnenlicht. Gelb, Grün und Blau sind die vorwiegenden Farben des Lichts aller Leuchtorganismen.
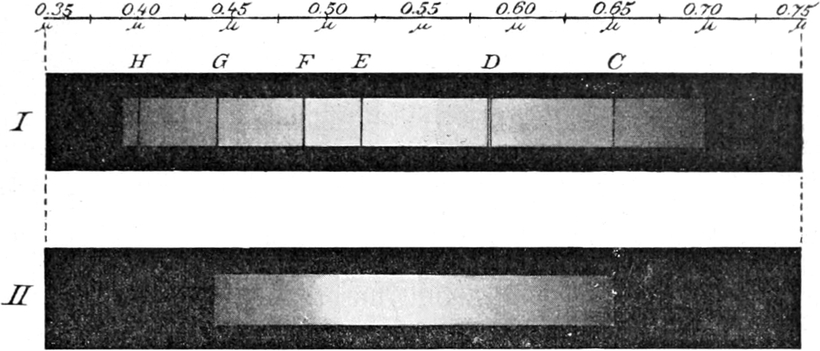
Fig. 127.
I
Spektrum vom Sonnenlicht
,
II
Spektrum von Pyrophorus noctilucus
. Nach L
ANGLEY
und V
ERY
.
Daß die Entstehung einer so eigentümlichen Lebensäußerung die Aufmerksamkeit der Forscher besonders gefesselt hat, ist leicht begreiflich, und es ist nicht zu verwundern, wenn eine unabsehbare Literatur über die Vorgänge des Leuchtens entstanden ist. PFLÜGER[243] hat bereits vor längerer Zeit eine Reihe der physiologisch interessanteren Angaben darüber zusammengestellt und PÜTTER[244] hat kürzlich in einem Uebersichtsreferat die neueren Erfahrungen über die Lichtproduktion der Organismen zusammenfassend dargestellt. Diese Zusammenstellungen zeigen, daß die verschiedensten Ansichten über die Entstehung des Leuchtens der Organismen aufgetaucht sind. Vor allem hat der dem Laien sehr naheliegende Gedanke, daß das Leuchten auf der Anwesenheit von Phosphor beruhe, mit dessen mildem Licht das organische Leuchten eine gewisse äußere Aehnlichkeit besitzt, früher großen Anklang gefunden. Allein, genaue Untersuchungen haben doch gezeigt, daß das Leuchten der Organismen mit Phosphor schlechterdings in keiner Beziehung steht. In der Tat hat man denn auch nirgends an leuchtenden Tieren eine Spur von freiem Phosphor oder leuchtenden Phosphorverbindungen gefunden. Indessen können wir mit Sicherheit sagen, daß das Leuchten der lebendigen Substanz wie beim Phosphor an den Ablauf langsamer Oxydationsprozesse gebunden ist. Das geht vor allem daraus hervor, daß das Leuchten nur bei Anwesenheit von Sauerstoff fortdauert, dagegen erlischt bei Sauerstoffentziehung, um erst wieder zum Vorschein zu kommen bei erneuter Sauerstoffzufuhr. Ferner hat FABRE[245] gefunden, daß der leuchtende Pilz Agaricus während des Leuchtens viel mehr Kohlensäure produziert, als wenn er nicht leuchtet. Sodann gehört hierher, was MAX SCHULTZE[246] an den Zellen der Leuchtorgane von Leuchtkäfern beobachtete, nämlich, daß diese Leuchtzellen immer mit den als Atemröhren dienenden „Tracheen“ in engster Berührung stehen, und wenn man sie unter dem Mikroskop mit Ueberosmiumsäure zusammenbringt, der letzteren Sauerstoff entziehen, eine Tatsache, die an der Entstehung eines schwarzen Niederschlages zu erkennen ist. Die leuchtenden Zellen verbrauchen also energisch Sauerstoff. Am stärksten schließlich zeigen die Abhängigkeit des Leuchtens von der Sauerstoffzufuhr die Leuchtbakterien, die besonders auf faulem Fleisch und faulen Seefischen in großer Formenzahl gedeihen. Legt man eine Bouillonkultur von Leuchtbakterien an, was nach den Methoden, die MOLISCH (l. c.) beschreibt, sehr leicht ist, und füllt man mit der leuchtenden Bouillon ein Reagenzglas, das man umgekehrt über Quecksilber aufstellt, so hört nach einiger Zeit das Leuchten allmählich auf. Läßt man dann aber von unten her ein paar Luftblasen in das Reagenzglas hineinsteigen, so beginnt sofort das Leuchten von neuem und zwar ist es, wie man leicht feststellen kann, allein der Sauerstoff, der das Leuchten von neuem anregt. Das geht z. B. auch recht schön aus den Versuchen von BEIJERINCK[247] hervor, der in eine Bouillonkultur von Leuchtbakterien chlorophyllhaltige Pflanzenzellen brachte. War das Leuchten im Dunklen allmählich in der Kultur erloschen, so genügte das Anstecken eines Streichholzes, um durch die Lichtwirkung auf das Chlorophyll wieder so viel Sauerstoff frei zu machen, daß das Leuchten der Bakterienkultur sofort wieder für einige Zeit zurückkehrte.
Alles das und manches andere weist darauf hin, daß es sich bei den organischen Lumineszenzvorgängen um Oxydationsprozesse handelt. Es lag daher sehr nahe, die Lumineszenz mit der Atmung in nähere Beziehung zu setzen und sie direkt als ein Nebenprodukt dieses Vorgangs zu betrachten. Das hat PFLÜGER auch getan. Er hat sich dabei vorgestellt, daß, wie die Atmung so auch das Leuchten der Organismen untrennbar mit ihrem Lebensprozeß verbunden sei und daher nur an der lebendigen Zelle stattfinden könne. PFLÜGER sagt: „Hier in dem wunderbaren Schauspiel der tierischen Phosphoreszenz hat die Natur uns ein Beispiel gegeben, welches zeigt, wo die Fackel brennt, die wir Leben nennen.“ „Es ist gewiß kein seltener Ausnahmefall, sondern nur die speziellere Aeußerung des allgemeinen Gesetzes, daß alle Zellen fortwährend im Brande stehen, wenn wir das Licht auch nicht mit unserem leiblichen Auge sehen.“
Indessen diese Vorstellung ist doch auf Grund neuerer Erfahrungen stark angezweifelt worden. Wenn auch die Lumineszenzvorgänge wohl allgemein Oxydationsprozesse sind, so fragt es sich doch, ob wir sie ohne weiteres mit den Atmungsvorgängen identifizieren dürfen, denn es ist in vielen Fällen von Lumineszenz der Nachweis geführt worden, daß sie sich extrazellulär an Sekreten der Leuchtorgane abspielen. Ist es auch nicht zu bestreiten, daß in zahlreichen Fällen das Leuchten intrazellulär erfolgt, so ist es ebenso sicher, daß in zahlreichen anderen Fällen die Leuchtorgane Drüsen sind, deren Zellen Stoffe absondern, die erst außerhalb der Zelle mit Sauerstoff sich verbinden und Licht produzieren, so daß man sie isoliert vom Organismus noch längere Zeit leuchtend erhalten kann. Dabei handelt es sich nicht etwa um ein Leuchten des Sekretes, das durch Leuchtbakterien vorgetäuscht sein könnte, denn man hat für einzelne Fälle mit Sicherheit die Anwesenheit von Leuchtbakterien ausschließen können. Es handelt sich vielmehr um die Lumineszenz von echten Sekreten. MOLISCH (l. c.), der sich in neuerer Zeit am eingehendsten mit den Vorgängen der organischen Lumineszenz beschäftigt hat, ist infolgedessen im Gegensatz zu den Vorstellungen, die in der Lumineszenz einen spezifisch „vitalen“ Prozeß erblicken, zu der Auffassung gekommen, daß von der lebendigen Substanz in ihrem Stoffwechsel bestimmte chemische Verbindungen, die er als „Photogene“ bezeichnet, gebildet werden, die nun, sei es innerhalb, sei es außerhalb der Zelle, sich mit Sauerstoff verbinden und dabei Licht produzieren.
Für eine kritische Betrachtung ist jedoch der Gegensatz zwischen diesen beiden Anschauungen nicht so groß, wie er auf den ersten Blick scheint. Mit dem Leben der Zelle ist der Chemismus der Lumineszenz auf alle Fälle in dem Sinne verbunden, als die Zelle in ihrem Stoffwechsel erst die Verbindungen produzieren muß, die nachher durch Oxydation lumineszieren. Ob diese Verbindungen von der Zelle sezerniert werden und außerhalb der Zelle bei Oxydation leuchten, oder ob der Vorgang innerhalb der Zelle abläuft, hat keinerlei prinzipielle Bedeutung. Ein Teilvorgang des Stoffwechsels, der sich aus dem Gesamtstoffwechsel isolieren und im Reagenzglase darstellen läßt, ist darum nicht weniger eine Lebensäußerung. Hoffen wir ja doch im Laufe der Zeit so weit zu kommen, daß wir alle Teilprozesse des ganzen Lebensvorganges erkennen und im Reagenzglase darstellen können. Würden wir von jedem dieser Teilprozesse, sobald er außerhalb der lebendigen Zelle dargestellt werden könnte, sagen: er ist kein Lebensprozeß, so würde schließlich unsere Erforschung des Lebens nach vollständiger Analyse aller Teilprozesse des Stoffwechsels mit der absurden Erkenntnis endigen, daß es überhaupt gar kein Leben in Wirklichkeit gäbe. Es ist also ein müßiger Streit, ob man die Lumineszenzvorgänge als „vitale“ oder nicht als „vitale“ Prozesse auffassen soll. Lebensäußerungen sind sie auf jeden Fall.
Anders liegt die Frage, ob man sie mit den Atmungsvorgängen ohne weiteres identifizieren darf, und in dieser Beziehung erweckt die Tatsache, daß die „Photogene“ bei vielen Organismen erst außerhalb der Zelle oxydiert werden, sicherlich Bedenken. Auf keinen Fall können wir mit Rücksicht auf diese Tatsache annehmen, daß der Lumineszenzvorgang mit dem normalen Atmungsvorgang identisch ist. Das schließt aber nicht aus, daß er genetisch und seiner Art nach mit der Atmung in engerer Beziehung steht. Wer sagt uns, daß der Atmungsvorgang immer nur in der Oxydation einer einzigen Verbindung besteht? Es wäre ja auch denkbar, daß im Stoffwechsel mancher Zellformen verschiedenartige Verbindungen gebildet werden, die der Atmung unterliegen und daß die Oxydation einer derselben mit Lumineszenz verknüpft ist. In diesem Falle wäre es ganz nebensächlich, ob dieser etwa durch Selektion gezüchtete Partialprozeß der Atmung sich innerhalb oder außerhalb der Zelle abspielte. Jedenfalls liegen durchaus keine Tatsachen vor, die der Möglichkeit, den Lumineszenzvorgang als einen besonders gezüchteten Teilvorgang der Atmung aufzufassen, im Wege ständen. Aber das alles sind Spekulationen, die uns in der Analyse der Lumineszenz nicht weiterführen.
Wenn wir in diesen Vorgang tiefer eindringen wollen, so treten uns vor allem zwei Fragen entgegen: erstens was sind diese „Photogene“ für Verbindungen? und zweitens: wie erfolgt ihre Oxydation? Zwar sind wir noch nicht imstande, diese beiden Fragen vollkommen sicher zu beantworten, aber eine Reihe von Tatsachen zeigt uns doch den Weg, auf dem wir ihre Beantwortung suchen müssen.
Ueber die Frage, welche Stoffe etwa als „Photogene“ bei der organischen Lumineszenz in Betracht kommen könnten, haben am meisten die schönen Untersuchungen von RADZISZEWSKI[248] Licht verbreitet. RADZISZEWSKI hat eingehend die Bedingungen studiert, unter denen chemische Stoffe Lumineszenz zeigen und hat gefunden, daß eine ganze Reihe von organischen Körpern leuchtet, wenn sie sich in alkalischer Lösung mit aktivem Sauerstoff langsam verbinden. Solche Körper sind vor allem viele Fette, ätherische Oele, Kohlenwasserstoffe und Alkohole. Bei vielen tritt das Leuchten schon unter gewöhnlicher Temperatur, bei anderen erst beim Erwärmen ein. Setzt man z. B. in einem Reagenzglase Oelsäure zu einer alkoholischen Lösung von Kalihydrat, so bemerkt man im Dunkeln ein kurzdauerndes Leuchten beim Auflösen. Läßt man, nachdem das Leuchten aufgehört hat, einen Tropfen Wasserstoffsuperoxydlösung in die Flüssigkeit fallen, so sieht man mit dem zu Boden sinkenden Tropfen einen hellen Lichtstreifen durch das Reagenzglas ziehen, weil das Wasserstoffsuperoxyd aktiven Sauerstoff an die Oelsäure abgibt. Noch deutlicher zeigt sich dasselbe Phänomen des Leuchtens, wenn man die Oelsäure in reinem Toluol auflöst, das ebenfalls ein phosphoreszenzfähiger Körper ist, und dann damit ein Stück Kali- oder Natronhydrat übergießt. Die Intensität des Leuchtens kann stets durch Umschütteln gesteigert werden, weil durch das Schütteln die freien Sauerstoffatome mit den Molekülen des phosphoreszenzfähigen Körpers noch mehr in Berührung gebracht werden. Tut man z. B. in einen Glaskolben eine aus gleichen Teilen bestehende Mischung von reinem Toluol und Lebertran, welch letzterer außer Oelsäure auch stets freie Sauerstoffatome einschließt, wirft man in die Mischung einige Stücke Kali- oder Natronhydrat, und erwärmt man das Ganze gelinde, so sieht man zunächst im Dunkeln kein Leuchten. Schüttelt man aber den Inhalt des Kolbens nur leicht um, so erblickt man „sofort ein schönes, wie ein Blitzstrahl die ganze Masse durchlaufendes Licht“. Es ist im höchsten Grade wahrscheinlich, daß es sich beim Leuchten der lebendigen Substanz um analoge Prozesse handelt. Fette und Oele etc. haben wir ja weit verbreitet in der lebendigen Substanz, und PANCERI gibt von gewissen leuchtenden Seefischen direkt an, daß das flüchtige Fett der leuchtende Körper sei. Stoffe, die eine alkalische Reaktion geben, sind ebenfalls überall in der lebendigen Substanz zu finden, und da wir schließlich wissen, daß das Leuchten der Organismen an Oxydationsprozesse geknüpft ist, so würde nur noch die Frage übrig bleiben, wie die Oxydation dieser Stoffe bei der organischen Lumineszenz erfolgt. Hier scheint zunächst eine Schwierigkeit vorzuliegen. In den Experimenten von RADZISZEWSKI war es aktiver Sauerstoff, der die langsame Oxydation besorgt. Aktiver Sauerstoff ist aber in der lebendigen Substanz nicht vorhanden und ebensowenig in den Sekreten, die extrazellulär leuchten. Indessen wir wissen seit mehreren Jahren bereits, daß die lebendige Substanz Enzyme besitzt, die Sauerstoff übertragen und die chemische Verbindungen zu oxydieren vermögen, welche an sich niemals mit dem Sauerstoff der Luft sich oxydieren würden. Diese Sauerstoffüberträger sind die sogenannten Oxydasen (vgl. p. 186), von denen wir im Laufe der letzten Jahre eine große Zahl kennen gelernt haben, die weite Verbreitung im Tier- wie im Pflanzenreiche besitzen. Auch den Atmungsprozeß selbst wird man sich möglicherweise nach dem Prinzip der Wirkungen solcher Oxydationsenzyme erfolgend denken müssen. Damit aber wären für die organische Lumineszenz prinzipiell die gleichen Bedingungen gegeben wie in den Experimenten von RADZISZEWSKI und wir dürfen mit großer Wahrscheinlichkeit heute annehmen, daß es sich beim Leuchten der Tiere und Pflanzen prinzipiell um die gleichen Vorgänge handelt wie dort.
3. Die Produktionvon Wärme.
Die Produktion von Wärme ist schon weit weniger sinnfällig als die Lichtproduktion. Während wir die Lichtproduktion bereits an der einzelnen Zelle mit Leichtigkeit beobachten können, ist die Wärmeproduktion der einzelnen Zelle wegen der geringen Größe des Objekts mit unseren rohen Instrumenten der Temperaturmessung überhaupt nicht meßbar. Und dennoch müssen wir annehmen, daß im Innern einer jeden Zelle Wärme produziert wird, denn in jeder lebendigen Zelle spielen sich Oxydationsprozesse ab, die mit Produktion von lebendiger Energie verlaufen, und die Wärme ist gerade diejenige Form der lebendigen Energie, die bei allen derartigen Prozessen ausnahmslos, sei es allein, sei es neben anderen Energieformen, resultiert. Ja, wir haben sogar guten Grund, mit PFLÜGER anzunehmen, daß in einzelnen Molekülen der lebendigen Substanz, z. B. bei der Entstehung des Kohlensäuremoleküls, blitzartig Temperaturen von mehreren tausend Grad Celsius entwickelt werden, da beispielsweise die Verbrennungswärme von 1 g Kohlenstoff 8,08 Kilogrammkalorien beträgt. Indessen, die Größe eines Kohlensäuremoleküls ist verschwindend klein in der Zelle, und das Molekül ist umgeben von einer ungeheuren Zahl von anderen Molekülen, die eine sehr niedrige Temperatur besitzen. Die plötzlich aufblitzende Wärme gleicht sich daher ebenso schnell aus, wie sie entsteht, und da die wärmebildenden Moleküle nicht alle gleichzeitig entstehen, sondern bald hier, bald dort zwischen der großen Masse anderer Moleküle auftauchen, so liegt es auf der Hand, daß die aus dem Ausgleich aller verschiedenen Einzeltemperaturen resultierende Gesamttemperatur der Zelle keine sonderliche Höhe erreichen kann. Dazu kommt, daß wir mit unseren rohen Methoden der Wärmemessung noch nicht einmal die wirkliche, nach außen abgegebene Wärme einer einzelnen Zelle messen können, da der größere Teil durch Leitung und Strahlung dabei verloren geht. Es ist daher notwendig, für die Feststellung der Wärmeproduktion nicht die einzelne Zelle, sondern größere Zellenkomplexe zu benutzen, wie sie umfangreiche Gewebemassen oder ganze Organismen bieten.
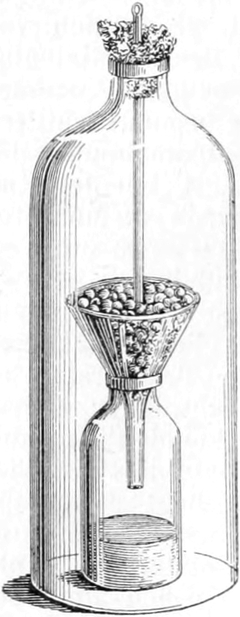
Fig. 128.
Vorrichtung zum Nachweis der Temperaturerhöhung beim Keimen von Erbsen
. Unter einer Glasglocke befindet sich ein Trichter mit keimenden Erbsen, in die ein Thermometerrohr hineinragt. Nach S
ACHS
.
Am deutlichsten macht sich die Produktion von Wärme bemerkbar am Körper der „homoiothermen“ Tiere, der sogenannten Warmblüter. Wir haben schon gesehen, daß man in neuerer Zeit die althergebrachte Einteilung der Tiere in Warmblüter und Kaltblüter zweckmäßig ersetzt hat durch die Einteilung in „homoiotherme“ und „poikilotherme“ Tiere, d. h. in solche, die unter allen äußeren Bedingungen immer die gleiche Körpertemperatur behalten, und solche, deren Körpertemperatur mit der Temperatur der Umgebung steigt und sinkt. Die homoiothermen Tiere zeigen am deutlichsten die Wärmeproduktion des Körpers, weil sie Vorrichtungen haben, die Wärme bis zu einer ganz bestimmten Höhe in sich aufzuspeichern und durch äußerst feine Regulierung auf dieser Höhe zu erhalten. Daher ist der Körper der homoiothermen Tiere bei nicht zu hoher Außentemperatur stets wärmer als das umgebende Medium. Das läßt sich einfach auf dem Wege thermometrischer Messung feststellen. So besitzt der Körper des Menschen in seinem Innern dauernd eine Temperatur von 37 bis 39° C, an seiner Oberfläche entsprechend der äußeren Abkühlung etwas weniger, in der Mundhöhle etwa 37, in der Achselhöhle ungefähr 36,5° C. Die höchste Körpertemperatur haben die Vögel mit ihrem lebhaften Stoffwechsel, z. B. die Schwalbe bis 44° C. Daß aber auch die poikilothermen Tiere, wenn sie unter Bedingungen sich befinden, unter denen die von ihnen produzierte Wärme aufgespeichert und nicht durch Leitung oder Strahlung an das Medium abgegeben wird, bedeutende Temperaturen erzielen können, geht aus der Tatsache hervor, daß Bienen in ihrem Bienenkorbe Temperaturen von 30 bis 40° erzeugen. Ja, selbst Pflanzen können, vor allem beim Keimen und bei energischem Wachstum, also wenn die Stoffwechselprozesse sich besonders lebhaft abspielen, ihre Temperatur thermometrisch erkennbar über die Temperatur der Umgebung erhöhen. So konnte z. B. SACHS an Erbsen, die er auf einem Trichter unter einer Glasglocke (Fig. 128) keimen ließ, mit dem Thermometer eine Temperaturerhöhung von 1,5° C feststellen. Ganz außerordentliche Werte aber sind an den Blütenkolben der eigentümlichen Aroideen während ihrer rapiden Entwicklung beobachtet worden. Hier fand man nicht selten Temperatursteigerungen von 15° C. Auch bei der Vergärung von Zuckerlösungen wird durch die Hefezellen eine Temperatursteigerung der Zuckerlösung erzeugt, die unter günstigen Bedingungen mehr als 14° C betragen kann.
Um indessen feinere Temperaturveränderungen festzustellen, besonders an den Geweben der poikilothermen Tiere, reicht die rohe Methode der Temperaturmessung mit dem Thermometer nicht aus, und man hat sich daher der feineren Methode der thermoelektrischen Temperaturmessung bedient. Bekanntlich wird in einem thermoelektrischen Element, das aus zwei verschiedenen, an einem Ende miteinander verlöteten Metallstücken (am besten Neusilber und Eisen oder Antimon und Wismut) besteht, durch die geringste Erwärmung der Lötstelle eine elektrische Spannung erzeugt. Verbindet man daher die beiden freien Enden der Metalle durch einen Draht, so daß ein geschlossener Kreis entsteht, so kann man von ihnen einen elektrischen Strom ableiten, dessen Vorhandensein durch die Ablenkung einer in seiner Nähe befindlichen Magnetnadel angezeigt wird. Für den Nachweis ganz schwacher elektrischer Ströme dienen besonders empfindliche Apparate, der „Multiplikator“ und das „Galvanometer“, deren Magnete schon bei den feinsten Strömen einen Ausschlag geben. Der Multiplikator besteht aus einem leicht beweglich aufgehängten „astatischen Nadelpaar“, d. h. zwei horizontalen Magnetnadeln, die beide parallel übereinander so befestigt sind, daß der Nordpol der einen über dem Südpol der anderen liegt. In der Nähe der unteren Magnetnadel ist der Draht des Stromkreises zu einer Rolle von außerordentlich vielen Touren aufgewickelt, so daß, wenn ein Strom hindurchgeht, jede einzelne Windung in gleichem Sinne ablenkend auf die Magnetnadel wirkt. Die obere Magnetnadel befindet sich über einer in Grade eingeteilten Scheibe, so daß man hier die Ablenkung der Magnetnadel messen kann (Fig. 129). Beim Galvanometer (Fig. 130 u. 131) hat der Magnet die Form eines Ringes, der an einem Kokonfaden in dem Hohlraum der windungsreichen Drahtrolle aufgehängt ist, und an dem Ringe ist ein kleiner Spiegel befestigt, der alle Bewegungen des Ringes mitmacht (Fig. 130 u. 131). In einiger Entfernung von dem Apparat steht ein Fernrohr, an dem sich eine Skala befindet, deren Spiegelbild man bei genauer Einstellung durch das Fernrohr im Spiegel des Galvanometers beobachtet (Fig. 131 I). Die geringste Ablenkung des Magnetringes zeigt sich daher im Fernrohr durch eine Verschiebung des Spiegelbildes der Skala an. Nach dem Umfang dieser Verschiebung kann man die Stärke des elektrischen Stromes und danach empirisch die Größe der Erwärmung des thermoelektrischen Elements, oder besser einer ganzen Säule von thermoelektrischen Elementen berechnen und so die feinsten Temperaturveränderungen feststellen, die ein lebendiges Gewebe erfährt.
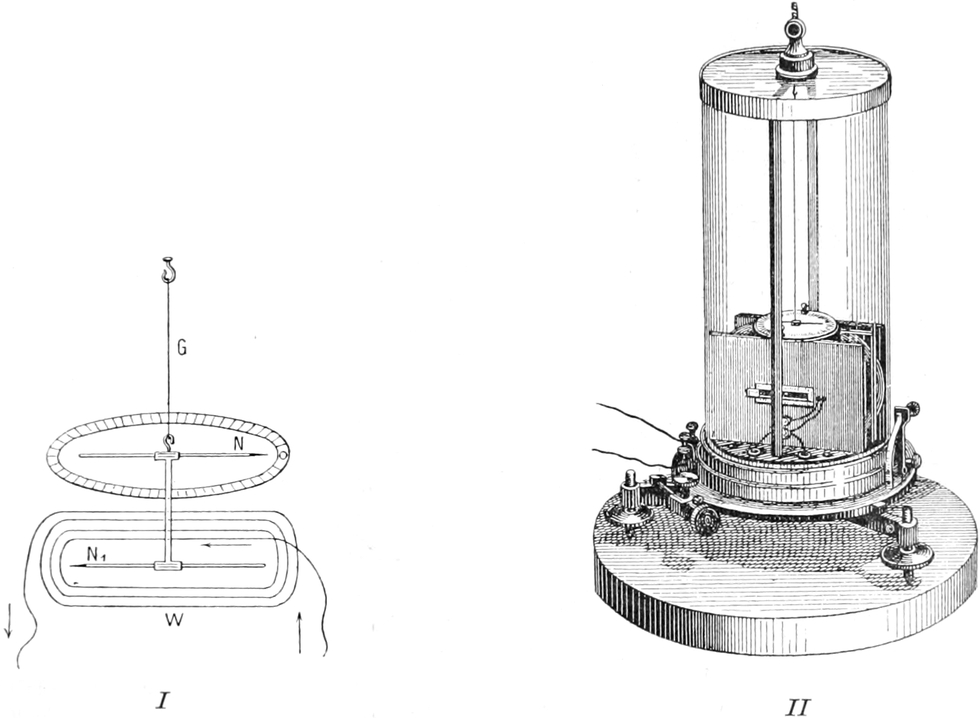
Fig. 129.
Schema eines Multiplikators
. An einem Kokonfaden
G
hängt das astatische Nadelpaar mit den Nordpolen
N
und
N
1
. Um die untere Nadel sind die Drahtwindungen
W
herumgeleitet, die obere Nadel bewegt sich über einer graduierten Scheibe. Nach L
ANDOIS
.
Bei derartigen Untersuchungen hat sich herausgestellt, daß bei stärkerer Tätigkeit der Zellen eines Gewebes, etwa einer Drüse oder eines Muskels, auch eine höhere Temperatur erzeugt wird als bei geringerer Tätigkeit oder in der Ruhe. Das ist ein Ergebnis, das mit unseren Auffassungen von der Wärmeproduktion im besten Einklang steht, denn die stärkere Tätigkeit der Zellen beruht auf einem stärkeren Stoffwechsel in ihnen, und die Wärme ist eine Energieform, die aus den chemischen Umsetzungen in der Zelle resultiert. Uebrigens ist es eine alte Erfahrung, daß man sich durch angestrengte Muskeltätigkeit in ergiebigster Weise erwärmen kann.
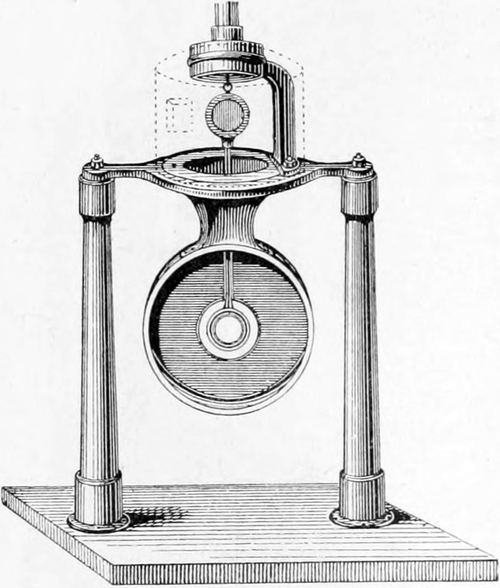
Fig. 130.
Schema eines Spiegelgalvanometers
(die Drahtrollen sind fortgelassen). In der Mitte befindet sich in der Oeffnung eines runden Kupfergehäuses der Magnetring pendelnd an einem Kokonfaden von einer (oben abgeschnitten gezeichneten) hohen Glasröhre herabhängend. In fester Verbindung mit dem Magnetring steht der Spiegel (an der Oese des Kokonfadens gleich unterhalb der Glasröhre), der jede Bewegung des Magnetrings mitmacht. Nach C
YON
.
Alle Temperaturmessungen, sei es mit dem Thermometer, sei es mit thermoelektrischen Methoden, dienen indessen nur dazu, die Höhe der Temperatur, die an irgendeiner Stelle des Organismus zu irgend einer Zeit herrscht, festzustellen. Sie geben keinen Aufschluß über die Wärmemenge, die der Organismus oder das einzelne Gewebe produziert. Allein auch diese Wärmemenge hat man festzustellen gewußt, indem man die Anzahl der Wärmeeinheiten oder „Kalorien“ untersuchte, die ein lebendiger Körper in einer bestimmten Zeit nach außen abgibt. So entstand neben der „Thermometrie“ die „Kalorimetrie“. Wie bereits erwähnt, ist eine Kilogrammkalorie diejenige Wärmemenge, welche notwendig ist, um 1 kg Wasser von 0° C auf 1° C zu erwärmen. Um daher die Anzahl der Kalorien zu messen, die ein lebendiger Körper, etwa ein Tier, in einer bestimmten Zeit produziert, hat man ein Wasserkalorimeter konstruiert, das aus einem ringsherum verschließbaren Kasten mit doppelter Wandung besteht. Der Raum zwischen den beiden Wänden wird mit Wasser gefüllt, in den Kasten selbst kommt das Tier hinein, und das Ganze wird durch einen nicht wärmeleitenden Mantel vor Abkühlung oder Erwärmung von außen her geschützt. Die Wärme, welche das Tier produziert. teilt sich dem Wasser mit und erhöht die Temperatur desselben, die man an einem Thermometer, das im Wasser steckt, ablesen kann. Verschiedene Einrichtungen dienen noch dazu, die Fehlerquellen, die auf etwaigem Verlust von Wärme beruhen, möglichst einzuschränken. So kann man aus der Menge des Wassers und der Erwärmung desselben in einer bestimmten Zeit die Wärmeproduktion des Tieres annähernd genau feststellen. In neuerer Zeit ist für physiologische Zwecke das Wasserkalorimeter mehr durch das Luftkalorimeter verdrängt worden, bei dem der Käfig, in den das Versuchstier sich befindet, umgeben ist von einem geschlossenen Luftmantel, dessen Luft durch die vom Tiere abgegebene Wärme ausgedehnt wird, so daß nach vorheriger Eichung des Apparates aus dem Grade ihrer Ausdehnung die Menge der produzierten Wärme sich leicht berechnen läßt. Teils mit der einen, teils mit der anderen Methode haben DULONG, DESPREZ, HELMHOLTZ, ROSENTHAL, RUBNER und KREHL die vom tierischen Körper produzierte Wärmemenge festgestellt. Da die sämtliche tierische Wärme aus der in den Körper eingeführten chemischen Energie der Nahrung stammt, und da alle Energie des Körpers unter den im kalorimetrischen Versuch gegebenen Bedingungen in letzter Instanz in Wärme umgesetzt wird, so muß die in Kalorien ausgedrückte Menge der chemischen Energie, die in den Körper durch die Nahrung eingeführt wird, nach dem Gesetz von der Erhaltung der Energie gleich sein der Menge der vom Körper nach außen abgegebenen Wärme. In der Tat hat sich auch dieses Resultat aus den Versuchen mit aller nur erreichbaren Genauigkeit ergeben, und damit ist die Gültigkeit des Gesetzes von der Erhaltung der Energie auch für den lebendigen Körper noch experimentell erhärtet.
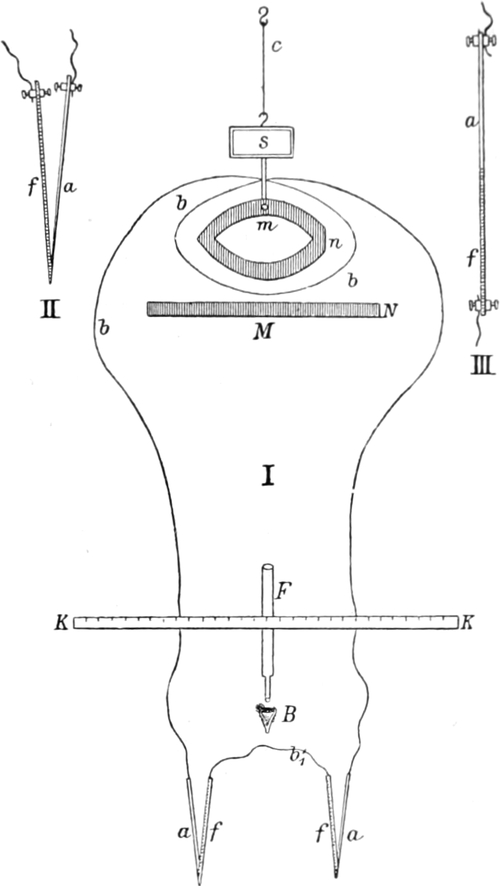
Fig. 131.
I
Versuchsanordnung für eine thermoelektrische Messung.
a
,
f
Thermoelektrische Nadeln, die einerseits durch den Draht
b
, andererseits durch den Draht
b
1
miteinander verbunden sind, welcher letztere um den Magnetring
m
mit dem Nordpol
n
in Windungen herumgeht. Der Magnetring
m
ist an einem Kokonfaden
c
aufgehängt und fest mit einem Spiegel
s
verbunden. Vor dem Magnetring befindet sich ein Magnetstab
M
mit dem Nordpol
N
in einer solchen Entfernung, daß der Magnetring sich eben gerade noch nach Norden einstellen kann. Daher genügt eine außerordentlich geringe Stromintensität, um ihn aus seiner Lage abzulenken. Vor dem Galvanometer befindet sich ein Fernrohr
F
mit einer Skala
KK
, deren Spiegelbild der Beobachter
B
in dem Spiegel
S
des Galvanometers beobachten kann, so daß er jede Bewegung des Spiegels resp. des Magnetrings an der Verschiebung des Spiegelbildes der Skala wahrnimmt.
II
und
III
Verschiedene Formen thermoelektrischer Nadeln.
a
Neusilber,
f
Eisen. Nach L
ANDOIS
.
4. Die Produktionvon Elektrizität.
Die Produktion von Elektrizität ist bisher nur in einem Falle an der einzelnen Zelle nachgewiesen worden, und zwar an den großen Pflanzenzellen der Algengattung Chara. Im allgemeinen sind selbst unsere feinsten Apparate zu roh, um sie auf die winzige Zelle anzuwenden. Es bedarf also auch hier größerer Zellenkomplexe zur Untersuchung. Die Fälle aber, in denen man an solchen die Elektrizitätsproduktion ohne besondere Hilfsmittel wahrnehmen kann, sind noch viel geringer an Zahl als die Fälle der direkt wahrnehmbaren Wärmeproduktion, die ja alle homoiothermen Tiere zeigen. Die Produktion von Elektrizität ist ausschließlich da ohne weiteres zu beobachten, wo sie im großen Maßstabe erfolgt, d. h. nur bei den elektrischen Fischen, deren heftige Schläge denn auch bereits den Alten bekannt waren. Im übrigen ist die Geschichte der tierischen Elektrizitätslehre eng mit der Entdeckung des Galvanismus verbunden und knüpft sich an die Namen GALVANI und VOLTA selbst. Gewiß ist es ein merkwürdiger Zufall, daß die Entdeckung der physikalischen Tatsache des Galvanismus von physiologischen Beobachtungen ausgegangen ist.
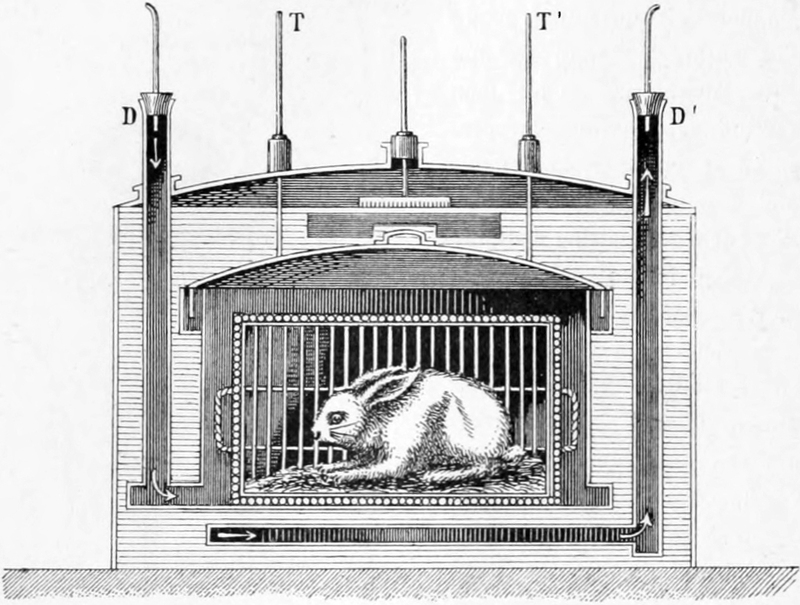
Fig. 132. D
ULONG
s
Wasserkalorimeter
. Kasten mit doppelter Wand. In dem breiten Raume zwischen beiden Wänden befindet sich Wasser, durch das in Schlangenwindungen ein Rohr nach dem Innern des Kastens läuft, um von außen her bei
D
dem Tiere, das sich im Kasten befindet, Luft zuzuführen und die verbrauchte Luft durch
D
′ wieder abzuführen. Bei
T
und
T
′ befinden sich Thermometer. Nach R
OSENTHAL
.
Es war an einem Septemberabend des Jahres 1786, als in der altertümlichen Universitätsstadt Bologna ALOISIO GALVANI auf der Terrasse seines Hauses Untersuchungen über den Einfluß der atmosphärischen Elektrizität auf abgehäutete Froschschenkel anstellte, wie er sie schon mehrere Jahre früher in Gemeinschaft mit seiner frühverstorbenen Gattin LUCIA ausgeführt hatte. Er zog dabei durch die noch mit den Nerven zusammenhängende Wirbelsäule eines Frosches einen kupfernen Haken. Da, als er dieses Präparat auf das eiserne Geländer der Terrasse legte, bemerkte er zu seinem Erstaunen, daß jedesmal, wenn der Haken das Geländer berührte, die darauf liegenden Froschschenkel heftige Zuckungen ausführten. Diese einfache Beobachtung sollte der Ausgangspunkt für die Entdeckung der Berührungselektrizität werden, deren unabsehbare Tragweite in kultureller Beziehung erst unsere Zeit würdigen lernen durfte. ALESSANDRO VOLTA fand nämlich die Erklärung dieser Beobachtung, indem er feststellte, daß bei der Berührung von zwei verschiedenen Metallen mit einem feuchten Leiter eine elektrische Spannung entsteht, die sich in Form eines elektrischen Stromes ausgleicht, sobald die Metalle miteinander verbunden werden. Die Nerven und Muskeln des Frosches bildeten bei GALVANIs Anordnung diese feuchte Leitung zwischen dem Kupferhaken und dem Eisengeländer. So ging der Strom durch die Nerven und reizte sie, daß die Muskeln zuckten. Leider kämpfte GALVANI gegen diese richtige Deutung VOLTAs selbst an, da er sich vorstellte, daß die Zuckung der Froschschenkel durch Elektrizität, die in ihnen selbst entstände, hervorgerufen sei. Allein, auch dieser Irrtum sollte den glücklichen Mann wieder zu einer neuen Entdeckung führen. Da er bemüht war, VOLTA zu beweisen, daß die Berührung der Metalle zum Zustandekommen der Zuckung nicht notwendig sei, so suchte er die Zuckung auch ohne Metalle zu erzeugen, und das gelang ihm, indem er den frisch präparierten Nerven eines Froschschenkels an seinem freien Ende mit dem Muskelfleisch in Berührung brachte. In diesem Versuch wird, wie wir jetzt wissen, der Nerv in der Tat von dem im Muskel selbst produzierten elektrischen Strom gereizt, und so wurde GALVANI Entdecker der tierischen Elektrizität, wie er vorher, wenn auch unbewußt, Entdecker der Berührungselektrizität geworden war.
Um die weitere Entwicklung der Lehre von der tierischen Elektrizität bemühten sich PFAFF, HUMBOLDT, RITTER, NOBILI, MATTEUCCI und andere; allein erst den klassischen Untersuchungen DU BOIS-REYMONDS[249] war es vorbehalten, dieses damals noch halb mystische Gebiet der Physiologie, das als eine der Hauptstützen für die Lehre von der Lebenskraft galt, auf eine klare, wissenschaftliche Grundlage zu stellen, und zwar dadurch, daß er zunächst eine zuverlässige und umfangreiche Untersuchungsmethodik schuf. Versuchsobjekte bildeten aus naheliegenden Gründen anfangs nur die Muskeln und Nerven des Frosches. Indessen bald zog DU BOIS-REYMOND auch die interessanten Erfahrungen an elektrischen Fischen mit in den Kreis seiner Untersuchungen, und zahlreiche Forscher, wie H. MUNK, HERMANN, ENGELMANN, HERING, BERNSTEIN, und in neuester Zeit besonders BIEDERMANN[250], BORUTTAU und WALLER untersuchten die Elektrizitätsproduktion der verschiedensten tierischen Gewebe, sowie auch der Pflanzen. Eine zusammenfassende Uebersicht über die elektrophysiologischen Tatsachen und Probleme hat in knapper und klarer Darstellung kürzlich MENDELSSOHN[251] gegeben.
Die ersten Schritte zum Verständnis der Elektrizitätsproduktion in der lebendigen Substanz verdanken wir den Untersuchungen HERMANNs. Die endgültige Aufklärung des ganzen Gebietes brachte erst die Entwicklung der modernen Elektrochemie. Daß aber die Lehre von der tierischen Elektrizität eines der bestgekannten Gebiete der Physiologie werden konnte, das ist unstreitig das Verdienst der grundlegenden Arbeiten DU BOIS-REYMONDs.
Die einfachste Methode, einen galvanischen Strom zu gewinnen, ist bekanntlich die, daß man zwei verschiedene Metallstreifen, etwa Kupfer und Zink, die an ihrem einen Ende miteinander verlötet sind, an ihren freien Enden mit einem „feuchten Leiter“, etwa einem nassen Faden, in Berührung bringt (Fig. 133 A). Im Moment, wo die beiden freien Metallenden durch den feuchten Leiter miteinander verbunden werden, beginnt ein elektrischer Strom in dem geschlossenen Kreise zu fließen, der vom Zink durch den feuchten Leiter nach dem Kupfer, und vom Kupfer durch die Lötstelle wieder auf das Zink übergeht und so lange zirkuliert, als der Kreis geschlossen bleibt. Es ist das die Anordnung, welche dem ursprünglichen GALVANIschen Experiment entspricht, bei dem der Nerv den feuchten Leiter zwischen den beiden Metallen Kupfer und Eisen vorstellte. Diese Methode ist in etwas vervollkommneter Form in den „galvanischen Elementen“ verwandt worden (Fig. 133 B), in denen als feuchter Leiter eine Flüssigkeit benutzt wird, während die beiden Metalle, die mit ihren unteren Enden in den Flüssigkeitsbehälter tauchen, an ihren oberen Enden anstatt durch Lötung durch einen Kupferdraht miteinander in Berührung stehen, was den Vorteil hat, daß man mittels des biegsamen Drahtes den Strom hinleiten kann, wo man ihn gerade braucht.
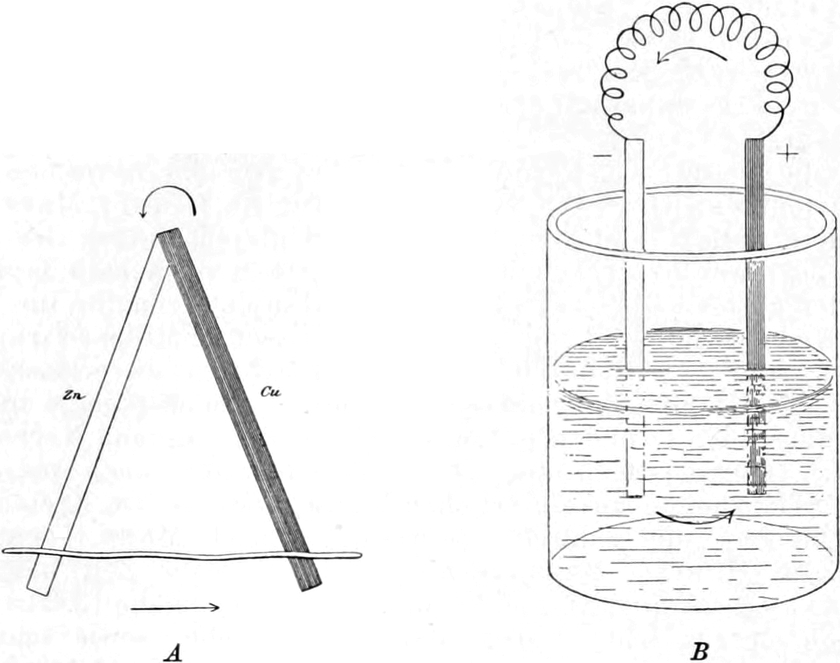
Fig. 133.
A
Primitive Vorrichtung zur Erzeugung eines galvanischen Stromes.
Zn
Zink,
Cu
Kupfer, beide unten verbunden durch einen feuchten Faden. Die Pfeile geben die Richtung des Stromes an.
B
Einfachste Form eines galvanischen Elementes. Zwei Metallstreifen (Kupfer + und Zink −) tauchen in eine Flüssigkeit und sind an ihren freien Enden metallisch miteinander verbunden. Der Strom geht in der Richtung der Pfeile.
Ueber die Entstehung eines galvanischen Stromes im Element hat NERNST[252] eine Vorstellung entwickelt, die sich in der Elektrochemie als außerordentlich fruchtbar erwiesen hat. Die Theorie von NERNST schließt sich aufs engste an die Anschauungen an, die wir durch die Untersuchungen von VAN ’T HOFF über die Natur der Lösungen gewonnen haben. Bekanntlich gelten nach diesen Anschauungen für die Lösungen dieselben Gesetze wie für die Gase. Die Moleküle des gelösten Stoffes bewegen sich in dem Lösungsmittel mit einer bestimmten Geschwindigkeit durcheinander, indem sie fortwährend gegeneinander und gegen die Wände des Gefäßes stoßen, abprallen, wieder anstoßen und so fort. Auf diese Weise übt der gelöste Stoff einen gewissen Druck aus, der als „osmotischer Druck“ bezeichnet wird. Wie wir bereits früher sahen, ist nach dem AVOGADRO-VAN ’T HOFFschen Gesetz dieser osmotische Druck abhängig von der Zahl der Moleküle des gelösten Stoffes. Man sollte also eigentlich erwarten, daß der betreffende Stoff, z. B. Salzsäure oder Schwefelsäure, in konzentriertem Zustande den größten osmotischen Druck haben sollte. Man war aber sehr erstaunt, als man fand, daß der osmotische Druck von Salzen, Säuren und Basen in gelöstem Zustande größer ist, als man ihn berechnete. Angesichts dieser Tatsache blieb nur übrig, entweder daß das AVOGADRO-VAN ’T HOFF’sche Gesetz nicht allgemein gültig war oder daß die Moleküle der gelösten Stoffe in wässerigen Lösungen zu einem bestimmten Prozentverhältnis in einfachere Bestandteile, Atome oder Atomgruppen, dissoziiert sind. Das letztere erwies sich als zutreffend. Wir wissen heute, daß z. B. Salzsäure in wässeriger Lösung in H- und Cl-Atome dissoziiert ist, und zwar in verdünnten Lösungen in größerer Molekülzahl als in konzentrierteren. Die Dissoziationsgröße der verschiedenen Stoffe hängt ganz ab von der Art der Stoffe, von der Art des Lösungsmittels und von der Konzentration. Reines Wasser ist so gut wie gar nicht dissoziiert.
Das Wichtigste ist nun aber, daß während das geschlossene Molekül eines gelösten Stoffes elektrisch indifferent ist, die Dissoziationsprodukte elektrisch geladen sind, und zwar die einen positiv, die anderen negativ. So ist das Wasserstoffatom H positiv geladen, das Chloratom Cl negativ:
+
−
HCl
=
H
+
Cl.
So ist bei der Dissoziation des Wassermoleküls, wie sie z. B. in wässerigen Lösungen entsteht, das Wassermolekül gespalten in ein Wasserstoffatom H und eine Hydroxylgruppe HO, von denen das erstere wieder positive, die letztere negative Ladung hat:
+
−
H2O
=
H
+
HO.
Man bezeichnet nun allgemein die mit negativer Elektrizität geladenen Atome oder Atomgruppen als „negative Ionen“ oder „Anionen“, die mit positiver Elektrizität geladenen als „positive“ oder „Kationen“. Nun haben die Metalle nach NERNSTs Theorie eine große Neigung, ihre Moleküle als Kationen an die Lösungen gewisser Salze abzugeben, und zwar wird diese Abgabe von Kationen um so größer sein, je größer die Lösungstension des Metalls ist. Durch die Abgabe der Kationen wird im Metall das elektrische Gleichgewicht gestört, denn da in dem nach außen elektrisch indifferenten Metall beide Elektrizitäten in gleicher Menge angenommen werden müssen, so muß entsprechend der Menge von positiver Elektrizität, die durch die in Lösung gehenden Kationen das Metall verläßt, eine gleiche Menge von negativer Elektrizität frei werden, die dem Metall eine negative Ladung gibt. Umgekehrt muß der Zuwachs an positiven Ionen der an sich nach außen elektrisch indifferenten Flüssigkeit eine elektrisch positive Ladung verleihen. Taucht man nun in die Lösung ein anderes Metall, dessen Lösungstension geringer ist als die des ersten Metalls, so werden sich auf diesem Metall jetzt umgekehrt aus der Flüssigkeit Kationen anlagern und demselben eine positive Ladung mitteilen. Es wird also eine elektrische Spannung zwischen beiden Metallen entstehen, und wenn man beide durch einen Leiter miteinander verbindet, wird in dem so geschlossenen Kreise ein elektrischer Strom zirkulieren, so lange wie zwischen den Metallen und der Lösung die entsprechenden elektrochemischen Umsetzungen stattfinden.
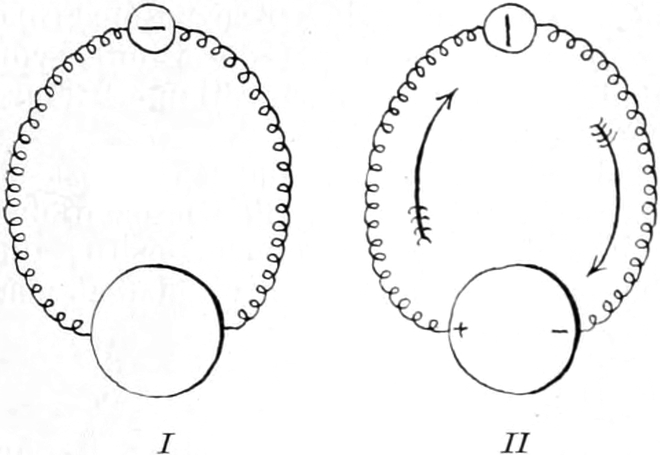
Fig. 134.
Schema
.
I
Ein Flüssigkeitstropfen, in dem die chemischen Prozesse an allen Punkten gleichartig sind, ist stromlos.
II
Ein Flüssigkeitstropfen, in dem an zwei verschiedenen Stellen verschiedenartige chemische Prozesse verlaufen, bei denen Ionen von verschiedener Diffusionsgeschwindigkeit auftreten, gibt bei der Ableitung einen Strom. Der große Kreis ist der Flüssigkeitstropfen, der kleine der Multiplikator mit Magnetnadel. Beide sind verbunden durch Drähte.
Wie wir durch die Untersuchungen der Elektrochemie, besonders seit der enormen Entwicklung, welche diese Wissenschaft nach den glänzenden Arbeiten von KOHLRAUSCH, ARRHENIUS, NERNST u. a. erfahren hat, wissen, kann bei den verschiedensten chemischen Prozessen eine Störung des elektrischen Gleichgewichts eintreten. Bei den verschiedenartigsten chemischen Spaltungsprozessen können positive und negative Ionen frei werden. Finden die gleichen chemischen Prozesse an allen Punkten eines Systems in gleichem Umfange statt, so läßt sich davon kein Strom ableiten, denn es besteht keine Spannung zwischen den Ableitungspunkten, weil an beiden sowohl positive als negative Atomgruppen in gleicher Menge entstehen (Fig. 134 I). Verlaufen aber in einem System, wie es eine Flüssigkeitsmasse vorstellt, verschiedenartige chemische Umsetzungen räumlich gesondert, so kann sich zwischen diesen beiden Punkten stets eine elektrische Spannung entwickeln, wenn die positiven und negativen Ionen, die dabei frei werden, verschiedene Wanderungsgeschwindigkeit bei ihrer Diffusion besitzen, so daß Konzentrationsdifferenzen in der elektrischen Ladung der beiden Ableitungsstellen entstehen. Es kann dann von diesen Punkten, solange die Prozesse andauern, ein galvanischer Strom nach außen abgeleitet werden (Fig. 134 II). Die Bedingungen, unter denen ein galvanischer Strom entsteht, können wir also in folgendem Satz ausdrücken: Von einem System ist ein Strom nach außen ableitbar, wenn in ihm chemische Prozesse auftreten, die zur Entstehung von Konzentrationsdifferenzen der gleichnamigen Ionen an beiden Ableitungsstellen Anlaß geben.
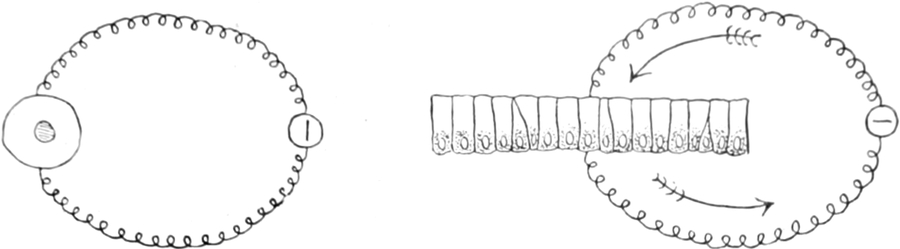
Fig. 135.
Schema
.
I
Eine Zelle, in der an allen Punkten ihrer lebendigen Substanz die gleichen chemischen Prozesse stattfinden, ist stromlos.
II
Polar differenzierte Zellen (z. B. Schleimhautzellen), bei denen an einem Pol andere chemische Prozesse ablaufen wie am anderen, geben einen Strom.
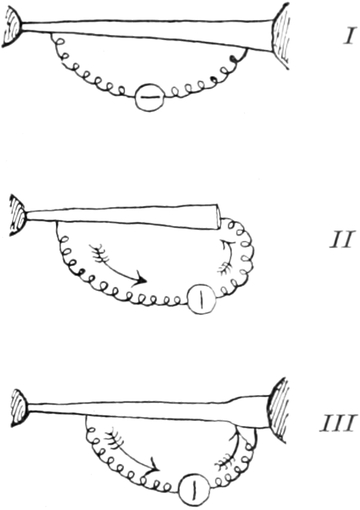
Fig. 136.
Schema. Musculus sartorius vom Frosch
. An beiden Enden befinden sich die Knochenansätze.
I
Unverletzt und ruhend ist er stromlos.
II
Verletzt (Querschnitt) gibt er einen Strom, und zwar ist die verletzte Stelle negativ.
III
Tätig (es läuft eine Kontraktionswelle von rechts her über den Muskel) gibt er einen Strom. Die tätige Stelle ist negativ.
Dieser Satz hat seine Gültigkeit für die lebendige Substanz ebenso wie für die leblose. Die lebendige Substanz einer Zelle ist ein Flüssigkeitstropfen, in dem sich komplizierte chemische Umsetzungen dauernd vollziehen. Sind dieselben an allen Punkten der Zelle gleich, so kann von der Zelle kein Strom abgeleitet werden (Fig. 135 I); sind sie aber an zwei verschiedenen Polen der Zelle qualitativ oder quantitativ verschieden, so daß sie zu Differenzen in der Jonenkonzentration Veranlassung geben, so resultiert eine Spannung zwischen diesen beiden Polen, und wenn man sie durch einen Schließungsbogen miteinander verbinden könnte, würde man einen Strom im Schließungskreise erhalten. An der einzelnen Zelle kann man freilich wegen ihrer Kleinheit diesen Versuch kaum anstellen, aber für den Zellenkomplex, für das Gewebe muß das gleiche gelten wie für die einzelne Zelle. Hier, am größeren Zellenkomplex, kann man auch in der Tat dieses Verhalten leicht konstatieren, und HERMANNs[253] „Differenztheorie“, welche sagt, daß nur dann von einem Gewebe (Muskel, Nerv, Schleimhaut etc.) ein Strom ableitbar ist, wenn an den beiden Ableitungsstellen verschiedenartige Prozesse stattfinden, ist nur der Ausdruck der tatsächlichen Verhältnisse. Ein ruhender unverletzter Muskel, wie z. B. der Musculus sartorius vom Frosch, an dem man sich am besten davon überzeugen kann, ist stromlos, weil an jeder Stelle dieselben inneren Vorgänge in gleicher Intensität stattfinden. Bringen wir aber an zwei Stellen des Muskels künstlich eine Differenz hervor, indem wir die eine Stelle erwärmen, oder indem wir einen Querschnitt machen, der mit einem lokalen Zerfall der lebendigen Substanz verbunden ist, oder indem wir schließlich eine Kontraktionswelle über den Muskel hinlaufen lassen, so bekommen wir einen elektrischen Strom, und zwar verhält sich dann, wie die Erfahrung gezeigt hat, die erwärmte oder absterbende oder kontrahierte Stelle stets negativ zu jeder normalen. Gewebe, deren Zellen nicht polare Verschiedenheiten besitzen, zeigen im umgekehrten Zustande niemals einen Strom, dagegen kann man von Drüsen und Schleimhäuten, deren Zellen polar differenziert sind, in der Weise, daß der untere Teil des zylindrischen Zellkörpers andere Stoffe und Stoffumsetzungen beherbergt als der obere, auch in ungestörtem Zustande stets verhältnismäßig starke Ströme ableiten (Fig. 135 II). Die von MENDELSSOHN gefundene, früher sehr auffällige Tatsache, daß der herausgeschnittene Nerv bei Ableitung von beiden Querschnitten einen axialen Strom zeigt, welcher der Richtung der Nervenleitung entgegengesetzt, d. h. beim motorischen Nerven zentripetal, beim sensiblen zentrifugal, verläuft, ist neuerdings von O. WEISS[254] in sehr einfacher Weise aufgeklärt worden. Die Differenz an den beiden Ableitungsstellen ist nämlich hier rein quantitativer Art und allein bedingt durch die verschiedene Zahl von Nervenfasern, die sich bei einem Nerven an zwei verschiedenen Querschnitten finden.
Nach den obigen Betrachtungen ist es selbstverständlich, daß man aus dem Auftreten von elektrischen Spannungen in lebendigen Objekten schlechterdings keinen Schluß ziehen kann auf die Art der Prozesse, die währenddessen in der lebendigen Substanz sich abspielen. Es können, wie gesagt, die allerverschiedenartigsten chemischen Umsetzungen zu chemischen Spannungen bezw. zu elektrischen Strömen Veranlassung geben. Die Hoffnung der älteren Physiologie, durch die Erforschung der Gesetzmäßigkeit bei der Elektrizitätsproduktion des lebendigen Objekts Aufschlüsse über den eigentlichen Lebensprozeß selbst zu gewinnen, dürfte daher nach der heutigen Entwicklung der Elektrochemie als gescheitert zu betrachten sein. Die ungeheure Bedeutung, die man einst der Erforschung dieser Lebensäußerungen beilegte, hat sich heute auf ein bescheidenes Maß reduziert.
Den Nachweis der Ströme führen wir wie bei den auf thermoelektrischem Wege entstehenden Strömen mittels des Multiplikators oder Galvanometers. In neuerer Zeit sind indessen für elektrophysiologische Zwecke diese beiden Methoden des Stromnachweises durch zwei andere Methoden mehr und mehr verdrängt worden, durch das LIPPMANNsche „Kapillarelektrometer“ und ganz neuerdings durch EINTHOVENs „Saitengalvanometer“. Das „Kapillarelektrometer“ beruht auf der Tatsache, daß die Oberflächenspannung zwischen Quecksilber und verdünnter Schwefelsäure vergrößert wird, wenn ein auch nur schwacher elektrischer Strom durch beide hindurchgeht. In einer Kapillarröhre, die von einer mit Quecksilber gefüllten Glasröhre ausgezogen ist, befindet sich das Quecksilber in Berührung mit verdünnter Schwefelsäure, in welche die Kapillare eintaucht, und gerade vor der Grenze zwischen Quecksilber und Schwefelsäure ist ein Mikroskop angebracht, mit dem man jede Verschiebung der Grenze, wie sie beim Hindurchgehen eines Stromes entsteht, beobachten und event. projizieren kann. In das Quecksilber sowohl wie in die Schwefelsäure führt je ein stromzuleitender Draht, der mit den Ableitungsstellen des Präparates verbunden wird. Das Ganze ist an einem geeigneten Stativ aufmontiert. Bei dem EINTHOVENschen „Saitengalvanometer“ handelt es sich um einen Apparat, der wiederum auf einem anderen Prinzip beruht. Hier beobachtet man mikroskopisch die Ablenkung, die ein äußerst feiner, versilberter und wie eine Saite zwischen den Polen eines starken Elektromagneten aufgespannter Quarzfaden erfährt, wenn ein galvanischer Strom durch ihn hindurchgeht. Der Faden wird dann senkrecht zu den magnetischen Kraftlinien abgelenkt und zwar proportional der Intensität des hindurchgehenden Stromes. Dieser neueste Apparat zum Nachweis feinster elektrischer Ströme ist besonders empfindlich.
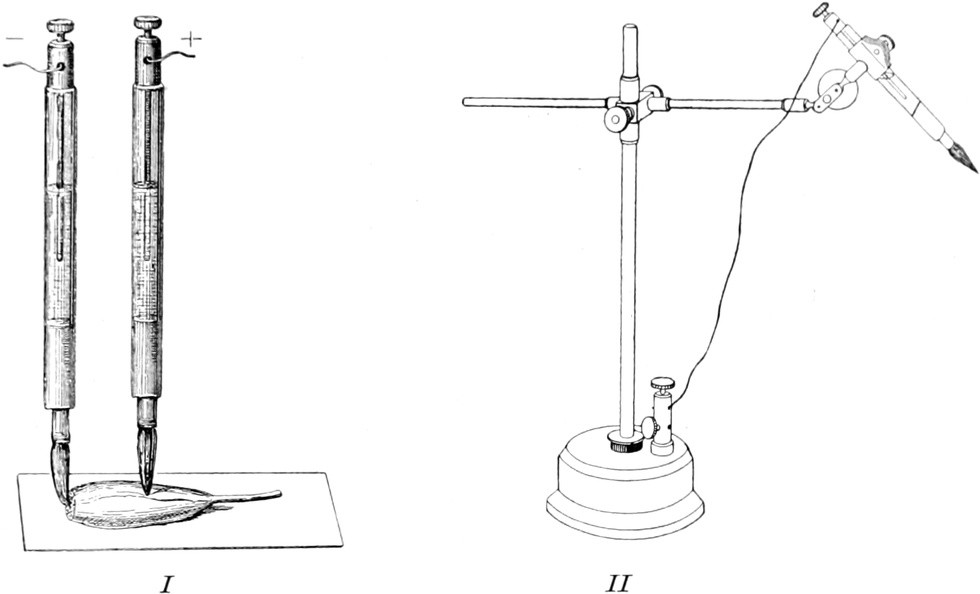
Fig. 137.
Unpolarisierbare Elektroden
.
I
Zwei unpolarisierbare Elektroden sind an einen durchschnittenen Wadenmuskel des Frosches angelegt.
II
Eine unpolarisierbare Elektrode in ihrem Stativ.
Für alle Untersuchungen über die Elektrizitätsproduktion der lebendigen Substanz ist schließlich noch eine besondere Vorrichtung der ableitenden Elektroden notwendig, wenn man falsche Resultate vermeiden will. Läßt man nämlich durch einen einfachen Metalldraht, dessen Enden in einen feuchten Leiter tauchen, längere Zeit einen Strom gehen, so treten an den beiden Enden des Drahtes, den Elektroden, elektrolytische Zersetzungsprodukte des feuchten Leiters auf und sammeln sich hier an. Die Ausscheidung dieser Produkte an den beiden Drahtpolen bedingt eine elektrische Spannung, die zu einem, dem ursprünglichen entgegengesetzt gerichteten Strome, dem sogenannten „Polarisationsstrom“, führt. Es liegt auf der Hand, daß, je stärker sich der Polarisationsstrom entwickelt, um so mehr die Intensität des ursprünglichen Stromes dadurch vermindert werden muß. Wenn wir daher von einem lebendigen Gewebe einen Strom mit Metallelektroden ableiten, so entwickelt sich sofort ein Polarisationsstrom, der das Bild des Gewebestromes vollständig verwischt. Um diesen Uebelstand zu vermeiden, hat man sogenannte „unpolarisierbare Elektroden“ konstruiert, die aus nicht metallischen Leitern bestehen. Die bequemste Form dieser „unpolarisierbaren Elektroden“ sind die von FLEISCHL angegebenen „Pinsel-Elektroden“, die aus einer mit konzentrierter Zinksulfatlösung gefüllten Glasröhre bestehen, welche unten durch einen Pfropf von plastischem Ton geschlossen ist. In dem Tonpfropf steckt ein kurzer, weicher, mit Kochsalzlösung angefeuchteter Pinsel; in die Zinksulfatlösung ragt ein amalgamierter Zinkstab, an dem der Draht befestigt wird (Fig. 137). Zwei solcher Elektroden, von denen jede in einem beweglichen Stativ steckt, werden dann mit ihren Pinseln an das lebendige Gewebe angelegt, und die Erfahrung hat gezeigt, daß man auf diese Weise den störenden Polarisationswirkungen aus dem Wege geht.
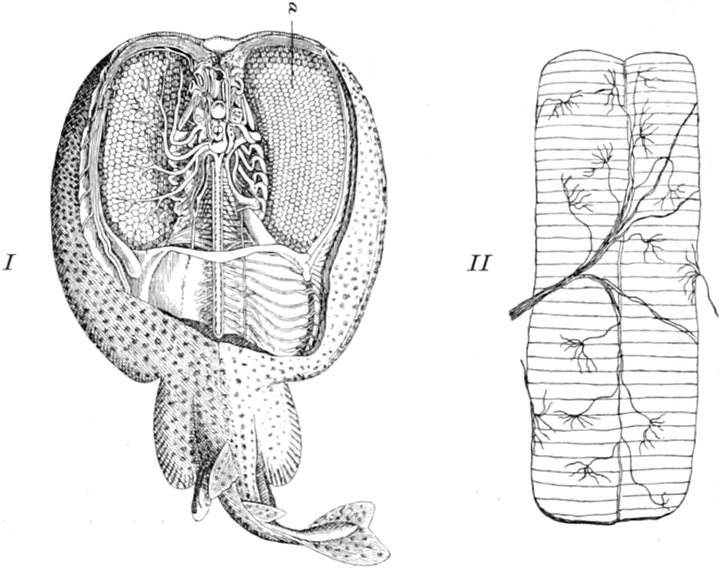
Fig. 138.
I
Torpedo marmoratus (Zitterrochen)
. Die Haut ist zum Teil weggeschnitten, damit das elektrische Organ
a
sichtbar ist, das aus lauter einzelnen polygonalen Säulchen besteht, die hier vom Querschnitt aus gesehen sind. Nach R
ANVIER
.
II
Zwei elektrische Säulchen von der Längsseite mit den sich darauf verzweigenden elektrischen Nerven von Torpedo. Nach R. W
AGNER
.
Handelt es sich bei der Elektrizitätsproduktion der meisten tierischen und aller pflanzlichen Gewebe stets nur um so schwache Ströme, daß zu ihrem Nachweis besonders empfindliche Apparate notwendig sind, so haben wir bei den interessanten Elektrizitätsentwicklungen der elektrischen Fische Ströme von ganz beträchtlicher Stärke, wenn auch die bekannte Erzählung ALEXANDER VON HUMBOLDTs, daß der südamerikanische Zitteraal Pferde durch seine Schläge zu betäuben vermag, auf einem Irrtum beruhen dürfte. Was die Ströme der elektrischen Fische den Strömen anderer Gewebe gegenüber am meisten charakterisiert, ist ihre kurze Dauer und große Intensität, so daß sie als kurze, starke elektrische „Schläge“ auftreten, die vom Tiere spontan oder auf Reizung mehrere Male hintereinander abgegeben werden können. Das wird selbstverständlich, wenn man bedenkt, daß die Elektrizitätsproduktion bei diesen Tieren als Verteidigungsmittel dient, das sich während ihrer Stammesentwicklung zu dieser enormen Wirksamkeit herausgebildet hat. Dementsprechend sind bei diesen elektrischen Fischen besondere Organe allein zur Elektrizitätsproduktion vorhanden. Es ist aber im höchsten Maße interessant, daß diese elektrischen Organe entwicklungsgeschichtlich denselben Ursprung haben wie die quergestreiften Muskeln, mit denen sie auch in ihrer vollständigen Ausbildung noch große Aehnlichkeit besitzen. Das elektrische Organ z. B. des Zitterrochens (Torpedo) ist aufgebaut aus vielen langen, im Querschnitt sechseckigen Säulchen (Fig. 138), die den Muskelfasern entsprechen. Jede dieser Säulen aber ist wieder zusammengesetzt aus gleichmäßig übereinanderliegenden Querscheiben (Fig. 139 A), die genau der Querstreifung der Muskelfaser homolog sind, ohne jedoch doppelt brechende Elemente zu besitzen, und ohne Formveränderungen bei der Tätigkeit zu erfahren. Noch größer ist die Uebereinstimmung des Baues der elektrischen Säulchen mit den quergestreiften Muskeln bei den „halbelektrischen“ oder „pseudoelektrischen“ Fischen, z. B. Raja clavata (Fig. 139 B I u. II). Hier tritt ein sehr interessanter und augenfälliger Funktionswechsel ein, indem sich die elektrischen Organe aus wirklichen, kontraktilen, quergestreiften Muskelfasern entwickeln, die mit dem Verlust ihres Kontraktionsvermögens ihre elektrischen Eigenschaften stärker hervortreten lassen. Allein, auch in der Tätigkeit des fertig entwickelten Organs besteht eine Aehnlichkeit mit der des Muskels; denn wie der Muskel bei der einzelnen Zuckung nur einen kurzdauernden Strom gibt, ebenso entsteht beim elektrischen Organ nur ein momentaner Strom, allerdings von unvergleichlich größerer Stärke.
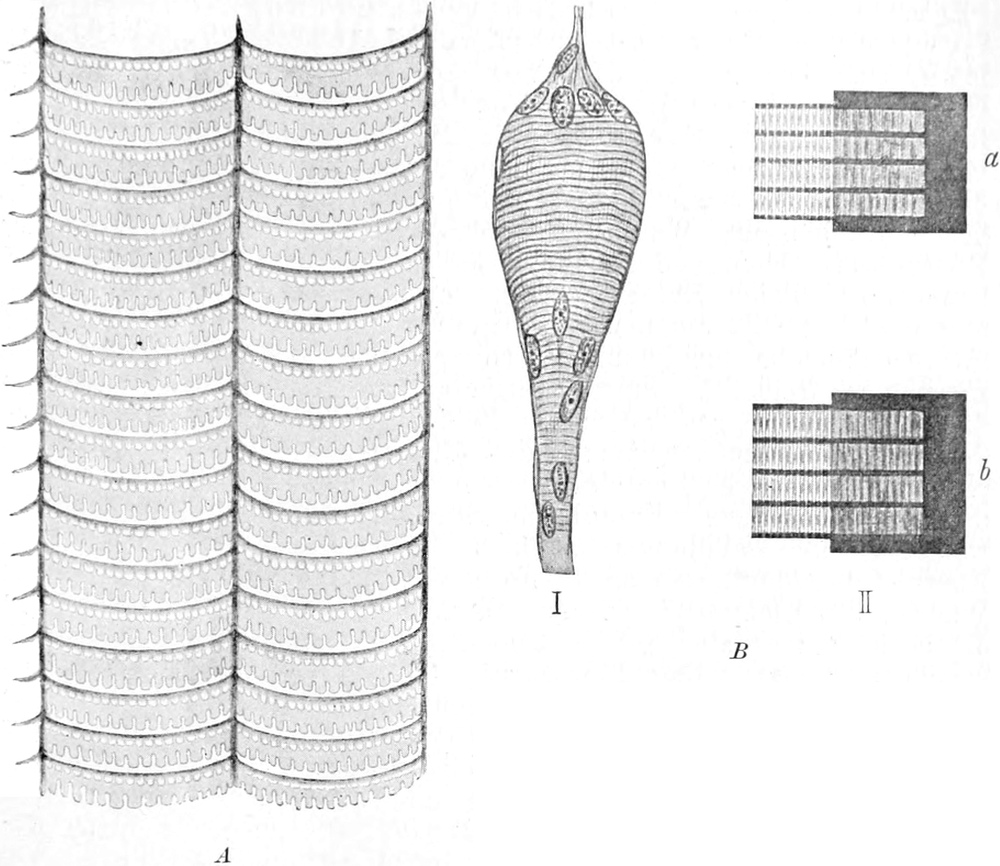
Fig. 139.
A
Zwei elektrische Säulchen von
Gymnotus electricus
. Nach S
CHULTZE
.
B
I
Säulchen aus dem pseudoelektrischen Organ von
Raja clavata
.
II
a
und
b
Einzelne Segmente daraus, stärker vergrößert. Linke Hälfte in gewöhnlichem, rechte in polarisiertem Lichte. Nach E
NGELMANN
.
** *
Unser Bild vom Energieumsatz in der lebendigen Substanz ist genau so lückenhaft wie das vom Stoffwechsel. Wie beim Stoffwechsel kennen wir auch beim Energiewechsel nur die Anfangs- und Endglieder der Reihe. Als chemische Energie und als Licht und Wärme tritt die Energie in den lebendigen Körper ein. Licht und Wärme werden dabei verbraucht, um ebenfalls chemische Energie zu schaffen, und zwar Licht, um in der Pflanze die Kohlensäure, die als solche keinen Energiewert besitzt, in Kohlenstoff- und Sauerstoffatome mit freien Affinitäten zu spalten, die Wärme, um die labilen Verbindungen der lebendigen Substanz durch Steigerung der intramolekularen Schwingungsintensität ihrer Atome zur Umlagerung zu bringen. Beide, Licht und Wärme, schaffen also verfügbare, chemische Energie. Die chemische Energie ist daher das Grundkapital für die Gewinnung aller anderen Energieformen im Organismus, aus ihr gehen alle vom Organismus produzierten Leistungen durch Umsatz hervor: mechanische Energie, Licht, Wärme, Elektrizität. In demselben Maße, wie diese neuen Energieformen vom Organismus abgegeben werden, verschwindet die chemische Energie. Als Endprodukte des Lebens sehen wir daher in Kohlensäure, Wasser, Ammoniak etc. Stoffe, deren chemischer Energiewert gleich Null oder doch äußerst gering ist, aus denen sich kaum noch kleine Energiemengen gewinnen lassen, und es bedarf erst wieder der Zufuhr neuer Energie von außen, und zwar des Lichts, um aus ihnen in der Pflanze durch Spaltung neue Energiemengen in Form von freien Affinitäten verfügbar zu machen. Das sind die Anfangs- und die Endglieder der Reihe. Welches aber im einzelnen die vielverschlungenen Wege des Energiegetriebes im lebendigen Körper sind, welche Energieformen in jedem speziellen Fall zunächst aus der eingeführten Energie hervorgehen, welche Zwischenglieder, welche Rückverwandlungen die in den Körper eingeführte chemische Energie durchläuft, bis sie in Form von Bewegung, von Licht, von Wärme, von Elektrizität wieder den Körper verläßt, das sind Fragen, die noch zum größten Teil in Dunkel gehüllt sind. Wir dürfen hier vornehmlich von dem Fortschritt unserer Kenntnisse über die spezielleren Stoffwechselprozesse mehr Licht erwarten, denn der Energieumsatz ist von den Stoffwechselvorgängen nicht zu trennen.
Wir haben der Uebersichtlichkeit wegen die Lebensäußerungen des Stoffwechsels, der Formbildung und des Energieumsatzes gesondert betrachtet. In Wirklichkeit sind alle drei Gruppen, wie immer wieder betont werden muß, nicht voneinander zu trennen, denn jeder Wechsel des Stoffes ist gleichzeitig ein Wechsel der Form und der Energie. Das gilt von der lebendigen Substanz wie von jedem anderen Objekt, das wir betrachten. Was wir gesondert mit verschiedenen Methoden untersuchen als Stoffwechsel, als Formwechsel, als Energiewechsel, ist ein und derselbe Vorgang, nur von verschiedenen Gesichtspunkten mit verschiedenen Sinnesorganen und verschiedenen Hilfsmitteln von unserer Seite aus betrachtet, und so können wir kurz sagen: Die gesamten Lebensäußerungen eines lebendigen Organismus sind der Ausdruck des kontinuierlichen Wechsels der Substanz, aus der er besteht, und dieser Wechsel ist eben das Leben.