Fünftes Kapitel. Von den Reizen und ihren Wirkungen. (continued 4)
Reading edition
Bei einem Frosch wird in die Aorta eine Glaskanüle gebunden und an ein kleines Pumpwerk angeschlossen, das im Rhythmus des Herzens eine gasfreie physiologische Kochsalzlösung in das Gefäßsystem hineinpumpt. Auf diese Weise wird das Blut durch die Kochsalzlösung allmählich verdrängt, so daß in den Adern des Tieres statt des ernährenden Blutes sehr bald eine völlig indifferente isotonische Flüssigkeit zirkuliert, die nur durch ihren Mangel an Nährstoffen und Sauerstoff wirkt. Gleichzeitig wird der freigelegte Nervus ischiadicus des einen Beines, dessen Musculus gastrocnemius als Indikator für den Zustand der Rückenmarkszentra dienen soll, durch eine kleine Narkosekammer mittels Aether eine Strecke weit blockiert, damit keine Impulse vom Rückenmark zum Muskel gehen können. Dieses Hilfsmittel ist nötig, weil sonst bei heftiger Arbeit der Rückenmarksganglienzellen die vom Rückenmark her kommenden Impulse sehr bald eine Ermüdung der sehr leicht ermüdbaren motorischen Nervenendapparate im Muskel herbeiführen würden, so daß nun keine Impulse zum Muskel mehr gelangen und die Muskeltätigkeit infolgedessen nicht mehr als Indikator für den Zustand der Ganglienzellen dienen könnte. Sobald indessen die erste heftige Tätigkeit der Zentra vorüber ist, kann die Blockade des Nerven ohne Nachteil wieder aufgehoben werden. Noch nach einer anderen Richtung hin müssen aber die sehr empfindlichen Nervenendapparate geschützt werden. Da nämlich zur Steigerung der Erregbarkeit des Rückenmarks dem Frosch Strychnin injiziert werden soll, und da dieses Gift lähmend auf die Nervenendapparate im Muskel wirkt, muß die Extremität, deren Muskel als Indikator dienen soll, vor der Giftwirkung geschützt werden, und das geschieht durch Unterbindung der Schenkelarterie. Ist der Versuch soweit vorbereitet, so erhält der Frosch, während die künstliche Zirkulation unterhalten wird, eine schwache Dosis Strychnin, wodurch die Erregbarkeit des Zentralnervensystems ins Ungeheure gesteigert wird. Sofort brechen die heftigsten Krämpfe bei dem Tiere aus. In dem Moment, in dem das geschieht, wird die künstliche Zirkulation sistiert, so daß die Ganglienzellen des Zentralnervensystems nunmehr ohne Zirkulation angestrengt arbeiten müssen. Infolgedessen kommt es bei der enormen Erregung und Tätigkeit der Ganglienzellen sehr schnell zu einer Arbeitslähmung. In kurzer Zeit sind die Neurone daher völlig unerregbar geworden. Wird nunmehr die künstliche Zirkulation mit gasfreier Kochsalzlösung wieder in Gang gesetzt, so erholt sich der Frosch in wenigen Minuten bis zu einem gewissen Grade. Die Erregbarkeit kehrt wieder. Diese Erholung kann also nur durch die Herausspülung von Ermüdungsprodukten erzeugt werden, denn neues Nährmaterial und neuer Sauerstoff wird ja durch die völlig indifferente Lösung nicht zugeführt. Bleibt jetzt aber die Zirkulation eine Zeitlang im Gange, so fängt das Zentralnervensystem bald von neuem an zu ermüden, bis es schließlich wieder völlig unerregbar geworden ist. Die Auswaschung des Rückenmarks mit physiologischer Kochsalzlösung hat also jetzt keinen erholenden Erfolg mehr und kann die Tätigkeit der Zentra nicht dauernd unterhalten. Wird dagegen jetzt statt der gasfreien eine sauerstoffhaltige Kochsalzlösung durchgespült, so erholt sich der Frosch in 1–2 Minuten von neuem, und zwar jetzt vollständig, ein Beweis dafür, daß die Arbeitslähmung im wesentlichen durch Mangel an Sauerstoff bedingt war. In der Tat, man kann sich gerade bei diesen Experimenten am Zentralnervensystem besser als in irgendeinem anderen Fall davon überzeugen, daß man auch bei angestrengtester Tätigkeit der Ganglienzellen viele Stunden lang die Erregbarkeit immer wieder herstellen und unterhalten kann mit Durchspülung der Zentra mittels einer einfachen physiologischen Kochsalzlösung, der man künstlich genügende Mengen von Sauerstoff zugeführt hat. Vermindert man die zugeführte Sauerstoffmenge, so tritt sofort auch wieder die Arbeitslähmung stärker hervor. Mit der den Ganglienzellen zugeführten Sauerstoffmenge steigt und sinkt die Dauer ihrer Leistungsfähigkeit.
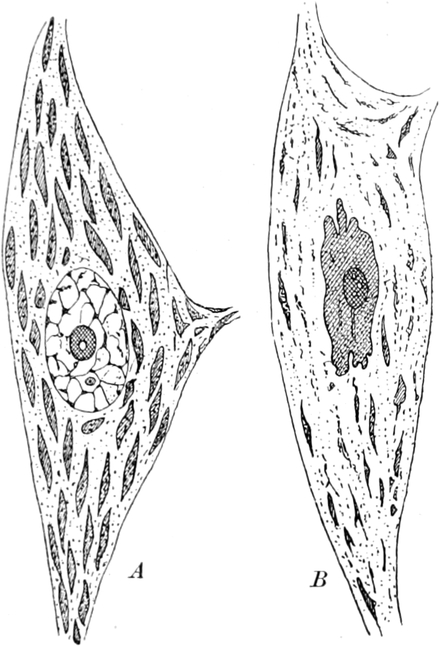
Fig. 260.
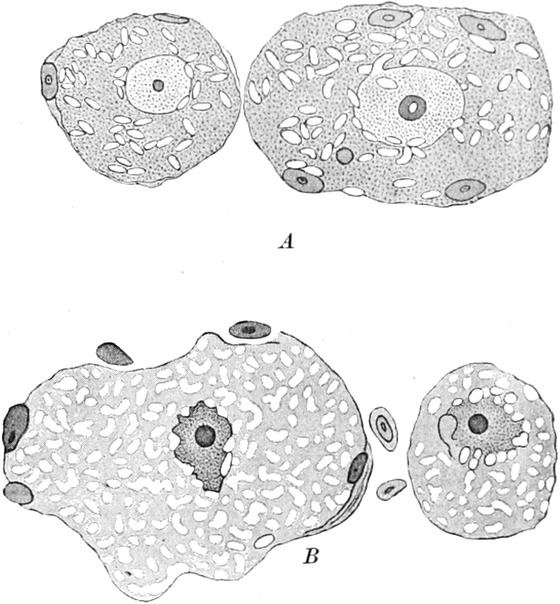
Fig. 261.
Fig. 260. Ganglienzellen vom Hund. A Normal, B ermüdet. Nach GUSTAV MANN.
Fig. 261. Ganglienzellen des Sperlings. A Morgens, B abends. Nach HODGE.
Es ist nun wiederum von Interesse, daß auch an den Ganglienzellen entsprechend den Symptomen der Arbeitslähmung histologische Veränderungen nachgewiesen werden konnten. So haben HODGE[554], G. MANN[555], LUGARO[556] und viele andere in neuerer Zeit an Ganglienzellen von Säugetieren, Vögeln und Insekten mikroskopisch deutliche Ermüdungswirkungen, sowohl am Protoplasma als auch besonders an ihren Zellkernen, festgestellt. Nach HODGE besitzen z. B. beim Sperling am Morgen nach der Ruhe die Ganglienzellen der Brachialganglien, welche die Flugmuskeln innervieren, helle, runde, bläschenförmige Zellkerne (Fig. 261 A), während sie am Abend nach der Anstrengung des Tages einen gezackten Kontur haben (Fig. 261 B). Ebenso sind bei der Katze nach Reizung von einigen Stunden die Kerne der Ganglienzellen, die vorher bläschenförmig und rund waren, geschrumpft und unregelmäßig konturiert, während die Anordnung des Inhalts sich wesentlich verändert hat. Nach MANN und in Uebereinstimmung mit ihm nach LUGARO besteht die Veränderung der Ganglienzelle während ihrer Aktivität im wesentlichen in einer Turgeszenz des Protoplasmas, während in der Ruhe wieder eine Volumenverminderung eintritt. Die NISSLschen Tigroidschollen, die infolge ihres Verhaltens gegen Anilinfarbstoffe so charakteristische Elemente des Ganglienzellenprotoplasmas vorstellen, lösen sich im Protoplasma mehr und mehr auf (Fig. 260). Dabei wird der Zellkern während der Arbeit unregelmäßig konturiert und immer chromatinärmer, und der Nucleolus kann, wie LUGARO fand, durch Ermüdung völlig zum Verschwinden gebracht werden. Am interessantesten sind vielleicht die histologischen Bilder, die genau den oben mitgeteilten Versuchen am Froschrückenmark entsprechen. GORDON HOLMES[557] hat in EDINGERs Institut die Rückenmarke der im Göttinger physiologischen Laboratorium unter den oben geschilderten Versuchsbedingungen ermüdeten Frösche mikroskopisch untersucht, so daß die beistehenden Bilder die exakten Parallelen zu den soeben geschilderten funktionellen Veränderungen liefern. Es hat sich dabei herausgestellt, daß hier bei andauernder Zufuhr von Sauerstoff aber gänzlichem Mangel an Nährstoffen in noch vollkommenerer Weise als in den oben genannten Fällen die NISSLschen Tigroidschollen mit andauernder Arbeit mehr und mehr bis zum vollständigen Schwinden verbraucht werden (Fig. 262).
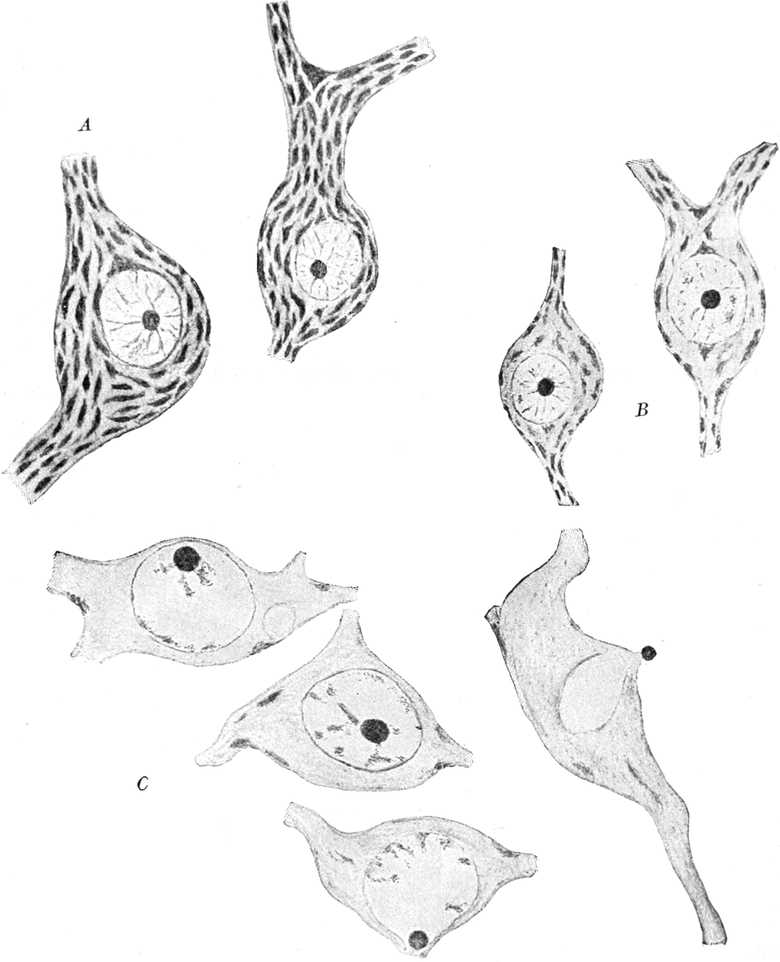
Fig. 262.
Ganglienzellen aus dem Rückenmark des Frosches
.
A
Normal,
B
nach 5¼-stündiger Durchspülung des Rückenmarks mit sauerstoffhaltiger Salzlösung bei andauernder Tätigkeit.
C
Nach 11½-stündiger Durchspülung mit sauerstoffhaltiger Salzlösung bei andauernder Tätigkeit. Nach G
ORDON
H
OLMES
.
Schließlich ist es von Interesse, auch noch auf die Ermüdung einer nur schwer ermüdenden Form der lebendigen Substanz einen Blick zu werfen, auf die Arbeitslähmung der Nervenfaser.
Wie bereits oben bemerkt, haben früher alle Versuche, die Nervenfaser zu ermüden, ein negatives Ergebnis gehabt. Erst im Jahre 1903 fand GARTEN[558] eine eigentümliche Nervenart, die sich leicht ermüden läßt, im Riechnerven des Hechtes. Dagegen waren alle Versuche an anderen Nervenfasern, vor allem an den markhaltigen Skelettnerven, vollkommen erfolglos geblieben. Nachdem sich aber aus den Ermüdungsversuchen am Zentralnervensystem ergeben hatte, daß die Ermüdung der Ganglienzellen in erster Linie durch Sauerstoffmangel bedingt ist, lag der Gedanke nahe, auch am Nerven Ermüdungsversuche unter Sauerstoffabschluß zu machen. Die Tatsache, daß der Nerv in einer sauerstofffreien indifferenten Stickstoffatmosphäre, wie H. VON BAEYER[559] und FRÖHLICH[560] gezeigt haben, oder in einer vollkommen sauerstofffreien physiologischen Kochsalzlösung, wie in jüngster Zeit FILLIÉ[561] nachgewiesen hat, allmählich seine Erregbarkeit verliert, ließ erwarten, daß der Nerv auch in einem vollkommen sauerstofffreien Medium, wenn er andauernd gereizt wird, schneller unerregbar werden mußte, als wenn er nicht gereizt wurde, denn wenn der Nerv, wie seine Abhängigkeit vom Sauerstoff zeigt, einen Stoffwechsel hat, so war auch anzunehmen, daß dieser Stoffwechsel bei dauernder Inanspruchnahme der Funktion des Nerven durch Reize erregt, also der Stoffverbrauch gesteigert werden müßte. In der Tat konnte auch FRÖHLICH[562] schon im Jahre 1904 echte Ermüdungssymptome am markhaltigen Nerven in einer reinen Stickstoffatmosphäre hervorrufen. Wenn man den Nerven, nachdem seine Erregbarkeit in einer reinen Stickstoffatmosphäre bis auf einen bestimmten Grad gesunken ist, mit schnell aufeinanderfolgenden Induktionsschlägen reizt, dann zeigt sich, daß von der ganzen Reihe der Induktionsschläge nur der erste wirksam ist und eine Zuckung des zum Nerven gehörigen Muskels hervorruft, während alle folgenden vollkommen wirkungslos bleiben. Erst wenn man die Reizung unterbricht und dann von neuem einsetzen läßt, ist wiederum der erste Induktionsschlag wirksam. Der erste Induktionsschlag ermüdet also den Nerven und da der Nerv keine Zeit hat sich zu erholen, bis der nächste Reiz folgt, bleiben alle folgenden Reize unwirksam. Ganz kürzlich hat nun THÖRNER[563] noch in anderer Weise die Ermüdung des Nerven demonstriert. Er benutzte nicht wie FRÖHLICH als Indikator für die Erregbarkeit des Nerven die Zuckung des dazugehörigen Muskels, sondern den bei jeder Erregung des Nerven an diesem selbst auftretenden elektrischen Aktionsstrom[564], den er mit einem Kapillarelektrometer sinnlich wahrnehmbar machte. Wenn er nun die beiden Nervi ischiadici eines und desselben Frosches in die gleiche Stickstoffkammer brachte und den einen der beiden Nerven an seinem einen Ende andauernd tetanisierte, während der andere in Ruhe blieb, so zeigte sich ausnahmslos, daß bereits nach kurzer Zeit der Aktionsstrom des tetanisierten Nerven sich bei der Prüfung beträchtlich schwächer erwies als der des nicht tetanisierten Nerven, und daß er schließlich ganz verschwand, während der des nicht tetanisierten Nerven stets viel länger zu erzielen war. Wurden dann beide Nerven wieder mit Sauerstoff versorgt, so erholten sich beide wieder vollständig und ihre Aktionsströme wurden wieder gleich stark wie im Beginn des Versuchs. Das beweist also deutlich, daß der Nerv unter Sauerstoffabschluß durch andauernde Reizung ermüdbar ist wie jedes lebendige Objekt. Seine spezielle Eigentümlichkeit ist aber die, daß er unter normalen Verhältnissen immer so viel Sauerstoff findet und diesen so gierig an sich reißt, daß eine Ermüdung nie zustande kommt. Infolgedessen ermüdet die Nervenfaser in unserem Körper niemals. Während die Ganglienzellen ungemein leicht ermüden, sind die Nerven unter physiologischen Bedingungen tatsächlich unermüdbar im Leben unseres Körpers. Wissen wir also aus anderen Erfahrungen, daß der erregungsleitende Teil des Nerven, der Achsenzylinder, nur ein Fortsatz des Ganglienzellkörpers ist, mit dem er zusammen eine einzige zellulare Einheit, das Neuron bildet, so sehen wir doch an diesem Beispiel, daß die Nervenfaser eine Differenzierung des Neurons vorstellt, die sich physiologisch, wenn auch nur quantitativ, sehr abweichend verhält vom Protoplasma des Ganglienzellkörpers. Die Versuche am Nerven haben aber trotz seiner schweren Ermüdbarkeit doch wieder in glänzender Weise die Abhängigkeit der Ermüdung von der Sauerstoffversorgung gezeigt und beweisen geradezu schlagend, daß bei genügender Sauerstoffzufuhr eine Ermüdung überhaupt nicht eintritt.
Was ergibt sich nun aus allen diesen Erfahrungen für die Theorie der Arbeitslähmung? Ziehen wir das Fazit, so müssen wir sagen, zwei wichtige Tatsachen haben sich ergeben, die in dem Vorgang der Arbeitslähmung zum Ausdruck kommen: einerseits Mangel an nötigem Ersatzmaterial zur Unterhaltung der normalen Lebensvorgänge und andererseits die Anhäufung von lähmend wirkenden Stoffwechselprodukten. Wir können diese beiden Tatsachen auch sprachlich in kurzen Ausdrücken unterscheiden, indem wir den Mangel an Ersatzmaterial als „Erschöpfung“, die Anhäufung von lähmenden Stoffen als „Ermüdung“ im engeren Sinne bezeichnen.
Die Erschöpfung im engeren Sinne ist, wie die sämtlichen Erfahrungen an allen aeroben Formen der lebendigen Substanz zeigen, unter physiologischen Verhältnissen, d. h. im intakten Körper, stets ein Mangel an Sauerstoff. Nur unter künstlichen, experimentell hergestellten Bedingungen, nämlich bei dauernd genügender Sauerstoffzufuhr unter Ausschluß aller anderen Nahrungsstoffe, können wir eine Erschöpfung erzielen, die in einem Mangel an anderem, vor allen Dingen wohl organischem Ersatzmaterial besteht. Das ist darin begründet, daß die lebendige Substanz, sofern sie überhaupt Sauerstoff in Reserve besitzt, nur sehr geringe Mengen zur Verfügung haben kann, während ihr Reservematerial an anderen, besonders an organischen Ersatzstoffen stets sehr reichlich vorhanden ist. Infolgedessen tritt bei angestrengter Tätigkeit sehr schnell Mangel an Sauerstoff ein, aber unter physiologischen Bedingungen kaum jemals Mangel an anderen Stoffen. Die Erschöpfung ist also unter physiologischen Bedingungen stets eine Erstickung, nur unter bestimmten experimentellen Bedingungen kann sie in einem Verhungern bestehen.
Die Ermüdung im engeren Sinne beruht auf einer Anhäufung von lähmend wirkenden Stoffwechselprodukten, die wir im einzelnen noch nicht chemisch namhaft machen können, die aber jedenfalls bei ein und derselben Form der lebendigen Substanz schon mehrere chemische Verbindungen vorstellen, und die voraussichtlich bei verschiedenen Formen der lebendigen Substanz untereinander wieder verschieden sind. Von diesen „Ermüdungsstoffen“ ist ein Teil sicher mit wässerigen Lösungen aus der lebendigen Substanz ausspülbar, ein anderer Teil scheint nicht mit solchen Spülflüssigkeiten aus der Zelle herauswaschbar zu sein, ein Verhalten, das sich aus den Eigenschaften der Protoplasmaoberflächen als semipermeabler Membranen verstehen ließe.
Was nun aber besonders wichtig ist, das ist die Tatsache, daß Erschöpfung und Ermüdung in einem untrennbaren Zusammenhange stehen, indem die letztere die Folge der ersteren ist. Der Mangel an Sauerstoff führt zur umfangreichen Anhäufung von Ermüdungsstoffen, die bei ausreichender Sauerstoffversorgung der lebendigen Substanz entweder gar nicht entstehen oder in demselben Maße wie sie entstehen, wieder beseitigt werden. Das zeigt uns der Nerv in geradezu klassischer Weise. Da der Nerv mit sehr geringen Sauerstoffmengen auskommt, so findet er schon an bloßer Luft oder im intakten Körper bei andauernder Tätigkeit genügend Sauerstoff, um dauernd von der Anhäufung lähmender Ermüdungsstoffe verschont zu bleiben. Nur wenn seine Sauerstoffversorgung geringer wird, als sein Sauerstoffbedarf, ist er ermüdbar.
So ist also jede Arbeitslähmung bei den aeroben Formen der lebendigen Substanz unter physiologischen Bedingungen stets identisch mit der Erstickung und ihren Folgen, denn sie beruht immer auf relativem Sauerstoffmangel.
2. Das Refraktärstadium.
Die Arbeitslähmung der lebendigen Substanz ist um so größer, je andauernder oder stärker ihre Erregung durch Reize, also ihre funktionelle Beanspruchung war. Schon bei kurzdauernder oder schwacher Reizung aber lassen sich geringe Lähmungssymptome beobachten und es konnte nachgewiesen werden, daß sogar schon ein ganz schwacher und momentaner Einzelreiz eine der Erregung folgende Arbeitslähmung hervorruft, eine Tatsache die, wie sich in neuster Zeit ergeben hat, von sehr großer Bedeutung ist für das Geschehen im Leben unseres Nervensystems.
Schon vor längeren Jahren hat MAREY[565] die Beobachtung gemacht, daß der Herzmuskel während der Zeit der Systole vollkommen unerregbar für Reize ist. Er wird erst wieder erregbar, wenn er den Gipfel seiner systolischen Kontraktion überschritten hat, und zwar nimmt von hier an während der Diastole seine Erregbarkeit allmählich zu bis sie wieder ihren Höhepunkt erreicht hat. Das Stadium der Unerregbarkeit, das mit jeder Systole einsetzt und die Systole mit abnehmender Stärke etwas überdauert, ist von MAREY als die „phase réfractaire“ bezeichnet worden. In neuerer Zeit ist dieses „Refraktärstadium“ des Herzens dann besonders eingehend in zahlreichen Arbeiten von ENGELMANN und seinen Schülern studiert worden.
Einige Jahre später haben RICHET und BROCA[566] ein gleiches Refraktärstadium an den Ganglienzellen der Großhirnrinde nachgewiesen. Diese Forscher hatten einen Hund, der an Veitstanz (Chorea) litt, d. h. der mit bestimmten Muskelgruppen in unregelmäßigen Intervallen kurze Zuckungen ausführte, deren Impulse von der motorischen Sphäre der Großhirnrinde herkamen. Sie legten nun bei diesem Tiere in Morphiumnarkose die Großhirnrinde frei und reizten die motorische Sphäre mit momentanen elektrischen Reizen. Dabei zeigte sich, daß die Reize immer wirksam waren, d. h. eine Zuckung in den entsprechenden Muskeln hervorriefen, wenn sie mehr als 0,1 Sekunde nach einer Choreazuckung angewendet wurden, daß die Großhirnrinde dagegen unmittelbar nach Entsendung eines Choreaimpulses für 0,1 Sekunde vollkommen unerregbar war. Das gleiche Refraktärstadium von 0,1 Sekunde stellte sich auch nach jeder durch einen künstlichen Reiz hervorgerufenen Impulsentladung der Ganglienzellen ein. Das sind ungemein wichtige Tatsachen, denn sie zeigen, daß die Ganglienzellen unseres Gehirns nicht kontinuierlich in Erregung sein, sondern nur rhythmische Entladungen liefern können. Hier trifft die Erfahrung an den Zentren zusammen mit der alten Erfahrung am Muskel, daß die willkürliche Muskelkontraktion, die ja durch Impulse von der Großhirnrinde her hervorgerufen wird, wie wir bereits sahen[567], nicht ein kontinuierlicher, sondern ein diskontinuierlicher Vorgang, mit anderen Worten eine tetanische Kontraktion ist. Dafür haben wir z. B. auch beim Menschen einen deutlichen Indikator in dem summenden „Muskelton“, der schon mit bloßem Ohre über einem willkürlich dauernd kontrahierten Muskel (Kaumuskelkontraktion bei über das Ohr gelegter Hohlhand als Resonator) zu hören ist. Da ein Ton nur durch rhythmisch intermittierende Bewegungsvorgänge entsteht, so muß die Muskelkontraktion rhythmisch intermittierend sein, und da seine Tonhöhe von der Zahl der rhythmischen Unterbrechungen abhängt, so kann aus der Höhe des Muskeltons die Zahl der willkürlichen Impulse in der Sekunde und daher also auch die Dauer des auf jeden Impuls folgenden Refraktärstadiums berechnet werden. Auf diese Weise hat sich ergeben, daß der normale Mensch nur ungefähr 18–20 Impulse in der Sekunde von der Großhirnrinde zum Muskel entsenden kann, daß also das Refraktärstadium der motorischen Ganglienzellen etwa eine Achtzehntel- bis Zwanzigstelsekunde beträgt. Man hat daher gesagt, der Mensch kann nicht öfter als 18–20 mal in der Sekunde „wollen“. Wenn nun auch die Berechnung der Impulszahl, welche die einzelne Ganglienzelle in der Sekunde entsendet, auf Grund der Höhe des Muskeltons aus mancherlei Gründen keine exakte und zuverlässige ist, so zeigt die Tatsache des Muskeltons doch ganz zweifellos, daß die Impulse diskontinuierlich von den Ganglienzellen entsendet werden und daß auf jede Impulsentladung ein Refraktärstadium folgt.
Weitere Versuche an den Zentren des Rückenmarks beim Frosch haben dann die wichtige Tatsache ergeben, daß die Dauer des Refraktärstadiums bei gleicher Temperatur allein abhängig ist von der Sauerstoffversorgung[568]. Diese Versuche, die mit der p. 552 beschriebenen Methodik ausgeführt wurden, zeigten, daß man durch Sauerstoffmangel die Dauer des Refraktärstadiums beliebig in die Länge ziehen und durch erneute genügende Sauerstoffzufuhr wieder bis auf Bruchteile einer Sekunde verkürzen kann. Bei dauerndem Sauerstoffmangel wird das Refraktärstadium immer länger, bis es schließlich unendlich ist, d. h. bis die Erregbarkeit sich überhaupt nicht wieder herstellt. Es ist aber nicht die absolute Menge des zur Verfügung stehenden Sauerstoffs, welche die Dauer des Refraktärstadiums bestimmt, sondern die relative Menge, d. h. die Menge im Verhältnis zum Bedarf der lebendigen Substanz. Der Bedarf aber wird bestimmt durch die Intensität des Stoffwechsels der lebendigen Substanz. Wird z. B. der Stoffwechsel sehr häufig in rhythmischer Weise durch Reize erregt, so reicht die Menge von Sauerstoff, die bei geringerer Reizfrequenz genügen würde, um nach jedem Reiz die vollständige Erholung zu gestatten, bald nicht mehr aus und das Refraktärstadium wird nach jeder Reizung länger. Das zeigt deutlich, daß das Refraktärstadium nichts weiter ist als der Ausdruck einer Arbeitslähmung. Ebenso wird natürlich der Sauerstoffbedarf abhängig sein von der Temperatur, da bei höherer Temperatur der Stoffwechsel intensiver ist als bei niedrigerer. Die Sauerstoffzufuhr, die bei niedriger Temperatur bei bestimmter Reizfrequenz eben ausreicht, um zwischen zwei Reizen immer vollständige Restitution zu gestatten, wird bei höherer Temperatur nicht genügen und daher trotz gleichbleibender Reizfrequenz zu immer längeren Refraktärstadien führen. Daß dagegen bei vollkommen ausreichender Sauerstoffversorgung die Dauer des Refraktärstadiums bei niedrigerer Temperatur größer ist als bei höherer, ist selbstverständlich, da ja Erniedrigung der Temperatur ganz allgemein verzögernd, Erhöhung aber beschleunigend auf den Ablauf chemischer Prozesse wirkt. Daher liefert z. B. das Rückenmark des Strychninfrosches, wie H. VON BAEYER[569] gezeigt hat, bei 1° C nur etwa 2–3 Impulse, bei 18° C dagegen etwa 12 Impulse in der Sekunde. Schließlich ist der Sauerstoffbedarf der lebendigen Substanz bei gleicher Temperatur nicht bloß abhängig von der Frequenz der Reizung, sondern bei den allermeisten Formen der lebendigen Substanz auch von der Intensität der Reize, weil fast überall innerhalb gewisser Grenzen die Größe des Reizerfolgs mit der Intensität des Reizes zunimmt. Daher wird das Refraktärstadium unter sonst gleichen Bedingungen nach einem stärkeren Reiz länger sein als nach einem schwächeren Reiz, d. h. es wird nach einem stärkeren Reiz länger dauern bis der status quo ante der lebendigen Substanz wieder hergestellt ist, als nach einem schwächeren Reiz. Es ist aber selbstverständlich zu berücksichtigen, mit welcher Reizstärke man dabei die Erregbarkeit während des Refraktärstadiums prüft. Da nach jeder Reizung die Erregbarkeit nur allmählich wieder ihren ursprünglichen Höhepunkt erreicht, so ist das Refraktärstadium für die Prüfung mit einem an der Reizschwelle gelegenen Reiz länger als für die Prüfung mit einem starken Reiz, der schon wieder einen Reizerfolg liefert, ehe die Erregbarkeit ganz auf ihr ursprüngliches Niveau zurückgekehrt ist. Daraus erklärt sich eine auf den ersten Blick sehr paradox erscheinende Tatsache, die jedem Physiologen wohlbekannt ist, nämlich die Tatsache, daß z. B. Nervmuskelpräparate für ganz schwache Reize, die eben gerade den Schwellenwert erreichen, viel leichter ermüden, als für starke Reize. Diese besonders für das Geschehen in unserem Nervensystem höchst wichtige Tatsache ist aber ohne weiteres verständlich, wenn man sich bewußt bleibt, daß die Ermüdung eben relativ ist in bezug auf die Reizstärke. Ist die Ermüdung nur ganz gering, d. h. die Erregbarkeit nur sehr wenig vermindert, so wird ein Schwellenreiz eben nicht mehr wirken, während ein starker Reiz eine starke Wirkung erzielt. Die Wiederherstellung der Erregbarkeit nach einer Erregung vollzieht sich aber so, daß sie von dem tiefsten Niveau anfänglich sehr schnell, dann aber langsamer und langsamer ansteigt, bis sie schließlich wieder ihren Ausgangswert erreicht hat. Der Begriff des „relativen Refraktärstadiums“, bei dem ein Objekt nur für eine gewisse niedrige Reizstärke refraktär ist, muß daher geschieden werden von dem Begriff des „absoluten Refraktärstadiums“, bei dem das Objekt überhaupt für jede, auch für die größte Reizstärke unerregbar ist.
Wir haben gesehen, daß die Arbeitslähmung der lebendigen Substanz allein abhängig ist von der relativen Sauerstoffversorgung, d. h. von dem Verhältnis des Sauerstoffbedarfs zur Sauerstoffzufuhr. Solange der Bruch Sauerstoffbedarf zu Sauerstoffzufuhr = 1 ist, tritt keine Arbeitslähmung ein. Erst wenn der Bruch größer wird als 1, also bei relativem Sauerstoffmangel, entwickelt sich die Ermüdung. Da nun das Refraktärstadium eine Form der Arbeitslähmung ist, so liegt es auf der Hand, daß von verschiedenen Formen der lebendigen Substanz, die unter gleichen Bedingungen der Sauerstoffversorgung und Temperatur sich befinden, diejenigen, welche schneller ermüden, auch ein längeres Refraktärstadium haben müssen. Ganglienzellen ermüden unter den Bedingungen, unter denen sie im intakten Körper stehen, sehr leicht, Nerven gar nicht. Es wäre also zu erwarten, daß das Refraktärstadium der Ganglienzellen verhältnismäßig lang, das der Nerven äußerst kurz ist. Das ist in der Tat der Fall. Während das Refraktärstadium der Ganglienzellen beim Frosch bei Zimmertemperatur etwa 0,1 Sekunde beträgt, ist das Refraktärstadium der Nerven so kurz, daß es kaum meßbar ist. Man hat es bei Anwendung von maximalen Reizen nur annähernd auf 0,001–0,005 Sekunden berechnen können. Daher ist der Nerv an der Luft, wo ihm Sauerstoff im Ueberfluß zur Verfügung steht, unermüdbar, denn es ist nicht möglich, eine genügend große Reizfrequenz von ausreichender Stärke auf ihn experimentell einwirken zu lassen, da mit zunehmender Frequenz der Reize die Dauer des elektrischen Einzelreizes sehr bald bis zur völligen Unwirksamkeit abnimmt. Wie NERNST und BARRATT[570] gezeigt haben, muß aber die Intensität des einzelnen Reizes bei zunehmender Reizfrequenz proportional der Quadratwurzel aus der Frequenzzahl wachsen, wenn der Reiz einen eben noch wahrnehmbaren Reizerfolg erzielen soll. Das ist für die Frequenzen, deren Intervalle kürzer wären als das Refraktärstadium des Nerven, experimentell mit unserer elektrischen Reizmethodik nicht zu erreichen. Nach dem oben Gesagten muß aber durch Sauerstoffmangel das Refraktärstadium des Nerven ganz beträchtlich in die Länge gezogen werden können und damit muß es auch gelingen, den Nerven zu ermüden. In der Tat hat FRÖHLICH[571] in einer reinen Stickstoffatmosphäre das Refraktärstadium des Nerven bis auf etwa 0,1 Sekunde verlängern können und dementsprechend erzielte er auch die Ermüdung des Nerven.
Für das Verständnis des Mechanismus der sämtlichen rhythmischen Lebensäußerungen, wie Herztätigkeit, Atembewegungen, tonische Erregungen, Wimperschlag, Vakuolenpulsationen etc. ist die Tatsache des Refraktärstadiums von grundlegender Bedeutung und jede Theorie des Rhythmus wird an diesen wichtigsten Faktor anknüpfen müssen[572].
3. Die scheinbare Erregbarkeitssteigerung durch Reize.
Schon seit langer Zeit ist die Tatsache bekannt, daß gewisse Reize, die bei längerer Dauer oder oft wiederholter Einwirkung eine Lähmung der lebendigen Substanz erzeugen, im Beginn ihrer Einwirkung erst ein Stadium gesteigerter Erregbarkeit hervorrufen. So ist z. B. ein solches „Exzitationsstadium“ im Beginn der Wirkung von Narcoticis oft beschrieben worden. Dem Arzt ist das Exzitationsstadium der Morphiumwirkung eine geläufige Tatsache. Auch für die Herztätigkeit ist eine solche erregende Wirkung z. B. des Alkohols behauptet worden. Da indessen in solchen Fällen, wo es sich um die Erregung von Tätigkeiten im komplizierten Zellenstaat des Wirbeltierkörpers handelt, die Genese sehr wenig klar ist, so war zu prüfen, ob sich ein derartiges Exzitationsstadium im Beginn der Narkose auch bereits an der einzelnen Zelle beobachten läßt. In der Tat hat H. NAGAI[573] an Infusorienzellen eine solche erregende Wirkung des Alkohols auf die Wimperbewegung im Beginn der Einwirkung oder bei äußerst schwachen Dosen durch sehr sorgfältige Versuche nachweisen können. Er bediente sich als Maßstab für die Wimpertätigkeit der Schwimmgeschwindigkeit der Paramäcien, indem er ihre Galvanotaxis benutzte und die Infusorien durch einen galvanischen Strom von immer gleicher Stärke zwang, eine bestimmt abgemessene Strecke in gerader Schwimmrichtung zurückzulegen. Dabei fand er, daß bei sehr schwachen Dosen von Alkohol ganz zweifellos die gleiche Strecke in kürzerer Zeit durchschwommen wurde, als ohne Alkohol, und als bei nur wenig stärkeren Dosen. Auch an der Nervenfaser war schon früher von WALLER[574] beobachtet worden, daß die Aktionsströme, die der Nerv bei Reizung mit tetanisierenden Reizen liefert, im Beginn der Einwirkung von Narcoticis eine Verstärkung zeigen, und BORUTTAU[575] konnte diese Angabe bestätigen. Er beobachtete dabei, daß diese Verstärkung des tetanischen Aktionsstromes zum großen Teil auf einer Verlängerung der Dauer der in der tetanischen Erregung enthaltenen Einzelerregungen beruht. FRÖHLICH[576], der eine wirkliche Erregbarkeitssteigerung niemals bei der Narkose am Nerven gefunden hatte, konnte dann in gemeinschaftlichen Versuchen mit BORUTTAU[577] nachweisen, daß im Gegenteil bei der Narkose trotz der Verstärkung des tetanischen Aktionsstromes stets eine Herabsetzung der Erregbarkeit, also eine Lähmung, vorhanden ist. Das schien zunächst sehr paradox. Aber FRÖHLICH[578] hat sehr bald nachgewiesen, daß beim Muskel in der Entwicklung der Arbeitslähmung[579] ein ganz analoges Verhältnis vorliegt, und er ist bei weiterer Verfolgung dieser Tatsache zur Entdeckung eines Prinzips gelangt, des „Prinzips der scheinbaren Erregbarkeitssteigerung“, das sich als ein Prinzip von ganz außerordentlicher Verbreitung und Bedeutung herausgestellt hat.
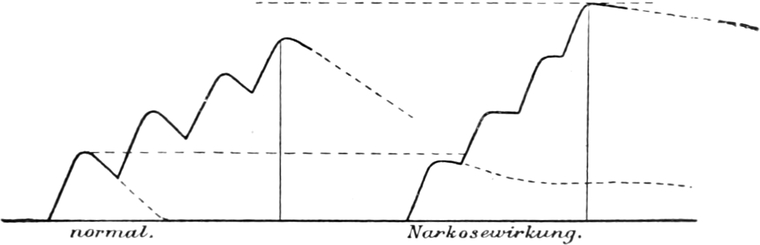
Fig. 263.
Schema der scheinbaren Erregbarkeitssteigerung
. Vier aufeinander folgende Zuckungen des Muskels. Links die Zuckungen des normalen, rechts die Zuckungen des narkotisierten Muskels. Der Zuckungsverlauf ist rechts, wie die punktierte Kurve im Vergleich mit der linken zeigt, in die Länge gezogen. Nach F
RÖHLICH
.
Um das scheinbare Paradoxon einer Erregbarkeitssteigerung bei allmählicher Lähmung zu verstehen, ist es zweckmäßig, wenn wir uns zunächst an die Veränderungen erinnern, die der Muskel bei der Ermüdung erfährt. Wir haben gesehen, daß die einzelne Zuckungskurve des ermüdeten Muskels sich von derjenigen des frischen Muskels dadurch unterscheidet, daß ihr Ablauf ganz beträchtlich verlängert ist, und zwar so, daß speziell der absteigende Schenkel der Kurve, welcher der Wiederstreckung des Muskels nach seiner Verkürzung entspricht, stark in die Länge gezogen ist. Das heißt mit anderen Worten, daß der ermüdete Muskel sich viel langsamer wieder streckt als der frische. Dazu kommt bei fortschreitender Ermüdung noch ein allmähliches Niedrigerwerden der Zuckungshöhe bis zum vollständigen Aufhören jeder Zuckung. Die Verlangsamung der Wiederstreckung des Muskels findet nun bei der allmählichen Ermüdung des Muskels durch rhythmisch aufeinander folgende Reize ihren ersten Ausdruck in der „Treppe“, d. h. in der Tatsache, daß die Zuckungen im Beginn der Reizung zunächst eine Zunahme ihrer Höhe erfahren. Hier liegt schon das scheinbare Paradoxon. Obwohl der Muskel durch die andauernde Arbeit allmählich gelähmt wird, werden seine Zuckungen dennoch höher. Dieses scheinbare Paradoxon löst sich aber sofort auf, wenn wir uns erinnern[580], daß bei einer Einzelreizung des Muskels an einem Ende desselben die Kontraktion in Form einer Welle vom gereizten nach dem anderen Ende hinläuft und daß der zuerst kontrahiert gewesene Teil des Muskels schon wieder erschlafft ist, wenn die Kontraktionswelle die entfernter gelegenen Teile erreicht hat. Es ist also, wie wir bereits gesehen haben, bei einer Einzelzuckung niemals die ganze Länge des Muskels gleichzeitig kontrahiert, sondern immer nur ein Teil. Danach ist es ohne weiteres klar, daß, wenn die Wiederstreckung der kontrahiert gewesenen Muskelsubstanz verlangsamt ist, selbstverständlich beim Ablauf einer Kontraktionswelle ein größerer Teil des Muskels gleichzeitig sich in Kontraktion befinden muß, als wenn die Streckung schneller geschieht, und das findet eben seinen Ausdruck in der größeren Verkürzung des Muskels bei der Einzelzuckung. So liegt also in Wirklichkeit gar kein Paradoxon vor. Auf Grund dieser selben Tatsache, daß durch die Ermüdung der Ablauf der Zuckungskurve verlangsamt wird, erklären sich aber auch die Verhältnisse, die man bei faradischer Reizung beobachtet. Der ermüdete Muskel zeigt, wie seit langer Zeit bekannt ist, eine gesteigerte Erregbarkeit für faradische Ströme, selbst in einem Stadium, in dem die Erregbarkeit für Einzelinduktionsschläge schon ganz beträchtlich gesunken ist. Die vorstehende Figur 263 wird dieses Verhältnis ohne weiteres verständlich machen. Das Schema gibt links vier übereinander gelagerte Zuckungen eines normalen Muskels, rechts eines ermüdeten Muskels wieder. Auf der linken Hälfte des Schemas sind die absoluten Höhen der Einzelzuckungen größer als auf der rechten Hälfte; trotzdem erreicht die Gesamtkurve bei dem ermüdeten Muskel rechts eine größere Höhe als bei dem frischen Muskel links, weil sich jede folgende Verkürzung rechts auf einen viel größeren Verkürzungsrückstand von der vorhergehenden Zuckung aufsetzt als links, wo die Streckung schon immer viel weiter vorgeschritten ist, wenn die nächste Zuckung folgt. So gibt also trotz der Abnahme der Erregbarkeit für den Einzelreiz der ermüdete Muskel für den faradischen Reiz doch stärkere Verkürzungen. Ja, man kann es sogar erreichen, daß faradische Reize von einer gewissen geringen Frequenz, die für den frischen Muskel unter der Reizschwelle liegen, und daher gar keinen Erfolg haben, beim ermüdeten Muskel wirksam sind und eine tetanische Kontraktion hervorrufen.
Genau wie bei der Ermüdung verhält sich der Muskel bei der Narkose oder bei der Abkühlung, denn alle diese Faktoren wirken in gleicher Weise auf den Ablauf der Zuckungskurve, indem sie in erster Linie den absteigenden Schenkel der Kurve, also die Wiederstreckung nach der Kontraktion verzögern. Sehr interessant ist es schließlich, daß auch die Symptome der sogenannten „Entartungsreaktion“ bei Muskeln, die sich in Inaktivitätsatrophie[581] befinden, wie REINECKE[582] kürzlich durch eine sehr eingehende Analyse gezeigt hat, genau identisch sind mit den Symptomen bei Ermüdung, Narkose, Abkühlung, und daß sie sämtlich zurückzuführen sind auf das Prinzip der scheinbaren Erregbarkeitssteigerung, dem in Wirklichkeit eine Lähmung zugrunde liegt.
Vollkommen identisch mit der scheinbaren Erregbarkeitssteigerung des Muskels ist ferner die Wirkung der gleichen Faktoren am Nerven. Bei der Arbeitslähmung, bei der Narkose, bei der Erstickung, bei der Abkühlung ist der Ablauf der Erregungskurve am Nerven in der gleichen Weise verändert wie am Muskel, wenn wir auch am isolierten Nerven keinen Ausdruck dafür in einer Verkürzung haben, sondern nur in dem Verhalten seines Aktionsstromes. Der absteigende Schenkel der Kurve des Aktionsstromes erfährt durch alle die genannten Faktoren eine starke Verzögerung. Infolgedessen finden hier genau die gleichen Verhältnisse Anwendung wie bei der Muskelzuckung, und wir bemerken bei faradischer Reizung trotz der lähmenden Wirkung der genannten Faktoren eine Verstärkung des Aktionsstromes.
Nach dem, was wir über die Vorgänge bei allen diesen Beeinflussungen kennen gelernt haben, ergibt sich nun für die Mechanik der scheinbaren Erregbarkeitssteigerung, wenigstens bei den aeroben Formen der lebendigen Substanz, ein einheitliches Prinzip, das allen speziellen Fällen zugrunde liegen dürfte: es ist die Verlangsamung der Oxydationen in der lebendigen Substanz. Zunächst liefern alle diejenigen Faktoren, die den Quotienten der relativen Sauerstoffversorgung, d. h. den Bruch Sauerstoffbedarf: Sauerstoffversorgung in dem Sinne ändern, daß er größer wird als 1, d. h. daß relativer Sauerstoffmangel eintritt, die Bedingungen für die scheinbare Erregbarkeitssteigerung. Bei der Erstickung ist das selbstverständlich der Fall. Für die Narkose haben WINTERSTEIN[583] an der Ganglienzelle und FRÖHLICH[584] am Nerven im Göttinger Laboratorium nachweisen können, daß während derselben eine Aufnahme von Sauerstoff seitens der lebendigen Substanz, auch wenn der Bedarf noch so groß ist, nicht stattfindet. Für die Arbeitslähmung haben wir oben gesehen, daß sie unter physiologischen Bedingungen allein auf einem relativen Sauerstoffmangel beruht. Es ist im höchsten Grade wahrscheinlich, daß auch bei der Atrophie die relative Sauerstoffversorgung der lebendigen Substanz eine Aenderung erfährt. Schließlich wird auch in der Kälte eine scheinbare Erregbarkeitssteigerung beobachtet, die z. B. auch die oben[585] angeführte, von BIEDERMANN beobachtete Steigerung der Erregbarkeit des Rückenmarks verständlich macht. Diese Wirkung der Kälte ist ohne weiteres klar, wenn man die Tatsache berücksichtigt, daß die Kälte alle chemischen Prozesse verzögert, also auch die Sauerstoffversorgung der lebendigen Substanz.
Nachdem einmal das Prinzip der scheinbaren Erregbarkeitssteigerung entdeckt war, zeigte sich, daß es überall im Organismenreiche beobachtet werden kann. Es wird daher nötig sein, die ganze Summe von paradoxen Erregbarkeitssteigerungen unter dem Einfluß schädigender, d. h. lähmender Momente, für die namentlich die Pathologie eine Fülle von Beispielen kennt, zu analysieren und in jedem Einzelfalle zu prüfen, ob die Erregbarkeitssteigerung nicht eine scheinbare ist und auf dem hier entwickelten Prinzip beruht.
4. Tod durch Ueberreizung.
Wir haben im vorigen Abschnitt gesehen, daß durch Ueberreizung Lähmungswirkungen hervorgerufen werden können. Diese Tatsache ist wichtig, denn sie zeigt uns, daß dieselben Reize, die bei geringer Intensität oder kurzer Dauer Erregung hervorrufen, bei höherer Intensität und längerer Dauer gerade die entgegengesetzten Wirkungen, d. h. Lähmungen, erzeugen können.
Die Arbeitslähmung, die wir soeben kennen gelernt haben, ist aber nur ein einzelnes Beispiel für dieses Verhältnis zwischen Erregung und Lähmung, das im übrigen viel weiter verbreitet ist. Die erregenden und lähmenden Wirkungen der Reize, die wir früher kennen lernten, liefern uns noch eine lange Reihe anderer Beispiele dafür. Hier sei z. B. erinnert an die Wirkungen des Wärmereizes. Die Lebensäußerungen erfahren im allgemeinen mit zunehmender Temperatur eine Steigerung bis zu einem gewissen Temperaturgrade, der für die verschiedenen Formen der lebendigen Substanz und für die verschiedenen Lebensäußerungen derselben Form sehr verschieden hoch gelegen ist. Hier erreicht die Erregung ihr Maximum. Wird aber dieser Temperaturgrad überschritten, so nimmt die Erregung schnell ab und macht einer vollkommenen Lähmung, der Wärmestarre, Platz. Das Wachstum und die Entwicklung der Eizellen, die Protoplasma- und Flimmerbewegung der einzelligen Organismen liefern deutliche Beispiele dafür.
Des weiteren sei daran erinnert, daß im Gebiete des Lichtreizes sich das gleiche Verhältnis findet. Geringere Intensität und kurze Einwirkung namentlich kurzwelliger Strahlen rufen an den verschiedensten Objekten Erregungswirkungen hervor. Bei längerer Dauer oder starker Intensität desselben Reizes tritt vollständige Lähmung ein.
Aus dem Gebiete anderer Reize würden sich leicht ebenfalls Beispiele für die Tatsache anführen lassen, daß steigende Reizintensität oder andauernde Reizung zunächst steigende Erregung, dann Lähmung erzeugt.
Der Enderfolg andauernder oder starker Ueberreizung ist schließlich stets der Tod; doch ist die Art, wie er sich entwickelt, je nach den Umständen im einzelnen Fall verschieden.
Bei andauernder, nicht allzu starker Reizung stellt er sich ziemlich allmählich ein, und man kann die Stadien des Reizerfolgs in solchen Fällen am besten verfolgen.
Ein Beispiel mag uns die Wirkung der Narcotica liefern. Setzen wir z. B. eine Infusorienzelle, etwa das Wimperinfusorium Spirostomum, der Einwirkung von Aether- oder Chloroformdämpfen aus, so sehen wir zuerst das Stadium scheinbarer Erregung. Allmählich tritt bei andauernder Einwirkung die Lähmung deutlicher hervor, bis vollständiger Stillstand des Wimperschlages eingetreten ist. Aus diesem Stadium läßt sich durch Unterbrechung der Reizwirkung und Wiederherstellung der normalen Lebensbedingungen das Leben meist noch zurückrufen. Dauert dagegen die Einwirkung noch weiter fort, so ist dies nicht mehr möglich: die Narkose ist unmittelbar in den Tod übergegangen. Eine etwas längere Folge von Wirkungen zeigt bei stetiger Zunahme seiner Intensität der Wärmereiz. Die Protoplasmabewegung der Amöben nimmt mit steigender Temperatur zu bis gegen 35° C. Hier nimmt die Bewegung plötzlich ab; die Amöben verharren im Kontraktionsstadium und machen höchstens noch ganz schwache Bewegungen, die bei wenig höherer Temperatur ganz aufhören. Das ist der Punkt der Wärmestarre. Nach Abkühlung von diesem Temperaturgrad kehrt die Bewegung wieder zurück. Steigt aber die Temperatur über 40°, so geht die Wärmelähmung in den Tod über. Bei der Wärmereizung haben wir, von dem Temperaturminimum beginnend bis zum Temperaturmaximum hinauf, eine lange Folge verschiedenartiger Reizwirkungen in größter Deutlichkeit vor uns: Stillstand der Lebensäußerungen in Kältestarre, steigende Erregung, Lähmung in Wärmestarre und schließlich Tod.
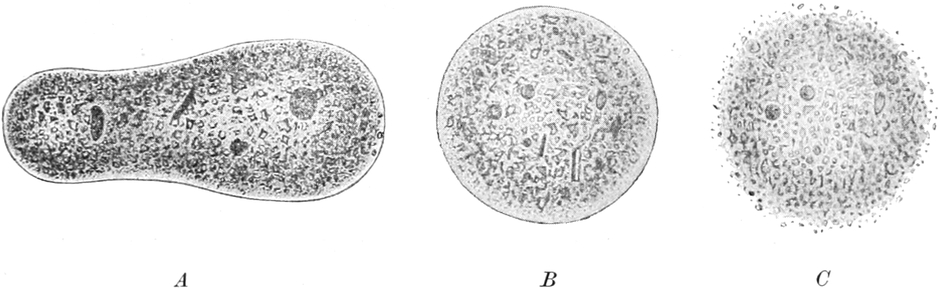
Fig. 264.
Pelomyxa palustris
.
A
Kriechend,
B
infolge schwacher chemischer Reizung kontrahiert,
C
bei längerer Reizung körnig zerfallend.
Nicht immer ist die ganze Reihe bis zum Tode in dieser Weise entwickelt. Sehr häufig fehlt das eine oder das andere Stadium ganz. Das hängt teils von der speziellen Beschaffenheit der lebendigen Substanz, teils von der Art und Weise der Reizung ab. Namentlich werden bei Einwirkung sehr hoher Reizintensitäten oft alle Stadien übergangen, und es erfolgt sogleich der Tod. Bisweilen tritt erst ein kurzes Erregungsstadium ein, aber die hochgradige Erregung weicht sehr schnell dem Tode. Wenn wir Pelomyxa, während sie ruhig kriecht, nur schwach mit Säuren, Alkalien, Chloroform etc. chemisch reizen, so zieht sie sich in wenigen Sekunden kuglig zusammen (Fig. 264 B), zeigt also den Ausdruck hochgradiger kontraktorischer Erregung. Erst im Verlauf längerer, gleichbleibender Einwirkung des Reizes beginnt der Protoplasmakörper von der Peripherie her körnig zu zerfallen (Fig. 264 C). Lassen wir dagegen den chemischen Reiz gleich von vornherein in größerer Intensität auf den in ruhiger Ausstreckung befindlichen Körper einwirken, so hat der Ausdruck eines Erregungsstadiums gar nicht erst Zeit zu seiner Entwicklung. Der Körper beginnt, ohne sich vorher zur Kugel zu kontrahieren, in der Form, die er im Moment der Reizung hatte, sofort körnig zu zerfallen (Fig. 264 B). Hier tritt also infolge der Reizung unmittelbar der Tod ein, während die anderen Stadien der Reizwirkung nicht Zeit haben, sich äußerlich zu entwickeln. Dasselbe sehen wir bei galvanischer Reizung. Reizen wir Actinosphaerium mit schwachen galvanischen Strömen, so treten die typischen Symptome kontraktorischer Erregung an der Anode ein. Die Pseudopodien zeigen zentripetale Strömung ihres Protoplasmas, das sich zu kleinen Kügelchen und Spindelchen zusammenballt und dem Körper zufließt, bis die Pseudopodien eingezogen sind. Wenden wir dagegen sogleich einen starken galvanischen Strom an, so hat das Protoplasma nicht erst Zeit, Kontraktionsäußerungen zur Ausbildung zu bringen, sondern es tritt sofort Zerfall des Protoplasmas an der Anodenseite ein.
Der äußerlich sichtbare körnige Zerfall des Protoplasmas infolge übermaximaler Reizung ist ein wertvolles Zeichen, wenn es sich, wie z. B. bei der Reizung mit dem galvanischen Strom, darum handelt, die Lokalisation einer Erregung festzustellen an Objekten, die sonst nicht ohne weiteres einen deutlich sichtbaren Ausdruck der Erregung erkennen lassen. In solchen Fällen braucht man nur übermaximale Stromintensität anzuwenden, und man erkennt an dem körnigen Zerfall des Protoplasmas sofort die Stelle, an der die Erregung lokalisiert war. Freilich ist das auch nur bei solchen Formen der lebendigen Substanz möglich, die überhaupt im Moment des Todes den körnigen Zerfall zeigen. Es gibt aber eine große Zahl von Zellformen, besonders solche, die mit einer festen Membran versehen sind, welche beim Absterben überhaupt nicht körnig zerfallen. Hefezellen z. B. kann man auf verschiedene Weise töten durch Ueberreizung, ohne daß der Körper zerfällt. Ihr Tod wird nur indirekt dadurch angezeigt, daß zugleich mit ihm die Fähigkeit, sich in Nährlösungen durch Sprossung zu vermehren, verloren gegangen ist. Auf die verschiedenen Formen, unter denen der Tod eintritt, brauchen wir indessen hier nicht mehr näher einzugehen, da wir dieselben bereits früher kennen gelernt haben[586]. Die Ueberreizung in ihrer allgemeinsten Bedeutung ist nichts anderes als das, was wir an anderer Stelle als äußere Todesbedingungen bezeichnet haben. Es bedarf daher auch nicht erst besonderer Erwähnung, daß die Ueberreizung nicht nur, wenn sie in einer Steigerung, sondern auch, wenn sie in einer Herabsetzung der als Lebensbedingungen wirkenden Faktoren besteht, bei Ueberschreitung einer gewissen Grenze schließlich den Tod zur Folge hat. Wir sahen ja bereits früher, daß sowohl eine Ueberschreitung des Minimums als des Maximums der Lebensbedingungen zu tödlichem Ausgange führt.
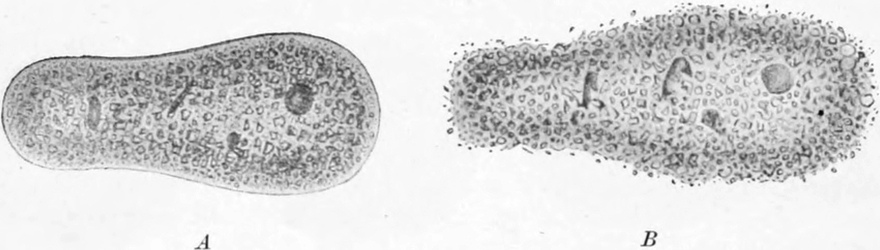
Fig. 265.
Pelomyxa palustris
.
A
Kriechend,
B
infolge starker chemischer Reizung körnig zerfallend.
D. Die „spezifische Energie“ der lebendigen Substanz.
Wir haben das Leben in einem früheren Kapitel als einen Naturvorgang aufzufassen gelernt, der wie alle Naturvorgänge zustande kommt, wenn ein bestimmter Komplex von Bedingungen erfüllt ist. Werden die Bedingungen verändert, so ändert sich auch der Vorgang; fallen sie ganz fort, so hört auch der Vorgang auf. In den Reizen haben wir nunmehr solche Veränderungen der Lebensbedingungen kennen gelernt. Unter dem Einfluß der Reize verändert sich der Lebensvorgang und hört ganz auf, wenn die Reize die Grenzen der Lebensbedingungen überschreiten. Innerhalb dieser Grenzen aber spielt sich die unermeßliche Fülle von Reizwirkungen ab.
Ueberblicken wir nun rückschauend noch einmal die bunte Mannigfaltigkeit der Reizwirkungen, die wir im vorhergehenden kennen gelernt haben, und sehen wir ab von der geringen Zahl der bisher noch wenig untersuchten und aufgeklärten Fälle, in denen, wie bei den metamorphotischen Prozessen der Nekrobiose, unter dem Einflusse von chronischen Reizen die Lebensvorgänge allmählich in eine perverse Bahn gedrängt und qualitativ verändert werden, so bemerken wir, daß die Reize innerhalb gewisser Grenzen nur eine einzige Art der Wirkung entfalten, die darin besteht, daß sie die Lebensvorgänge primär nur quantitativ verändern, indem sie ihre Intensität entweder steigern oder herabsetzen. Die Reize rufen also primär nicht neue Lebensäußerungen hervor, sondern erzeugen nur eine Erregung oder Lähmung der schon bestehenden spezifischen Lebensäußerungen jedes Objekts. Es ist aber im höchsten Grade wahrscheinlich, daß auch in den Fällen chronischer Reizung, in denen sich allmählich eine qualitative Veränderung der spezifischen Lebensvorgänge als Folge des Reizes bemerkbar macht, die primäre Reizwirkung nur in einer quantitativen Veränderung eines oder mehrerer Glieder des spezifischen Lebensvorganges besteht, und daß die qualitative Veränderung erst die sekundäre Folge der andauernden quantitativen Störung des Getriebes vorstellt.
Betrachten wir daher speziell die quantitativen Veränderungen der spezifischen Lebensprozesse einer gegebenen Form der lebendigen Substanz, so bringen diese Reizwirkungen die bemerkenswerte Tatsache zum Ausdruck, daß die verschiedenartigsten Reizqualitäten vollkommen gleichartige Wirkungen an demselben Objekt hervorrufen. Eine Amöbe können wir durch chemische, mechanische, thermische, galvanische Reize zur Einziehung ihrer Pseudopodien und Annahme der Kugelgestalt veranlassen; die Zellen eines Flimmerepithels können wir auf chemische, mechanische, thermische, galvanische Reizung mit einer Beschleunigung der Flimmerbewegung antworten sehen, und bei Noktiluken können wir durch chemische, mechanische, thermische, galvanische Reize Lichtentwicklung erzeugen.
Diese wichtige Tatsache zeigt uns, daß in jeder speziellen Form der lebendigen Substanz eine außerordentlich große Neigung zu einer ganz spezifischen Folge von Prozessen bestehen muß, und zwar zu derselben Folge von Prozessen, die in einem bestimmten Umfange dauernd spontan sich abspielt und in den Lebensäußerungen ihren Ausdruck findet. Diese charakteristische Folge von Prozessen kann einerseits durch die leisesten Anstöße der verschiedensten Art befördert werden. Wie das Nitroglyzerinmolekül durch mechanische sowohl als durch galvanische wie durch thermische Einwirkungen zum explosiven Zerfall in stets gleiche Bestandteile veranlaßt werden kann, so kann auch in jeder Form der lebendigen Substanz durch die verschiedenartigsten Reize immer die Folge ihrer spezifischen Lebensprozesse in gesteigertem Maße ausgelöst werden. Anderseits kann auch diese Folge von Prozessen durch gewisse Reize verzögert und ganz zum Stillstand gebracht werden, ebenso wie die Explosibilität der Explosivstoffe durch bestimmte Einwirkungen, etwa Befeuchtung mit Flüssigkeiten, herabgesetzt oder aufgehoben werden kann.
Was JOHANNES MÜLLERs große Entdeckung der spezifischen Energie der Sinnessubstanzen besonders für die Erregung der mit Sinnesorganen versehenen Tiere gelehrt hat[587], das ist also in seiner erweiterten Form eine Tatsache, die ganz allgemeine Verbreitung hat und tief im Wesen aller lebendigen Substanz begründet ist. Alle lebendige Substanz besitzt eine spezifische Energie im Sinne JOHANNES MÜLLERs, denn innerhalb gewisser Grenzen rufen ganz verschiedenartige Reize an der gleichen Form der lebendigen Substanz die gleichen Wirkungen hervor, während umgekehrt der gleiche Reiz an verschiedenartigen Formen der lebendigen Substanz eine ganz verschiedene und für jede Form charakteristische Wirkung erzeugt[588].
Es ist selbstverständlich, daß man bei der Tatsache der spezifischen Energie ein Moment nicht vergessen darf, das aller lebendigen Substanz gemeinsam ist, das Moment der Entwicklung. Alle lebendige Substanz entwickelt sich andauernd und einen wirklich stationären Zustand gibt es mit Ausnahme des Zustandes des latenten Lebens, in dem die Lebensprozesse vollkommen stillstehen, bei keiner Form der lebendigen Substanz[589]. Es mag in einem Fall die Entwicklung ungeheuer langsam, im anderen wieder sehr schnell sich vollziehen, niemals aber ist der Zustand irgendeiner gegebenen Form der lebendigen Substanz in zwei verschiedenen Zeitpunkten in mathematischem Sinne gleich. Infolgedessen wird derselbe Reiz, der zu zwei verschiedenen Zeitpunkten die lebendige Substanz trifft, auch nicht beide Male auf vollständig gleiche Bedingungen treffen und so kann es kommen, besonders bei schnell sich vollziehender Entwicklung, daß der Reizerfolg des gleichen Reizes von gleicher Qualität, Intensität und Dauer zu verschiedenen Zeiten auch äußerlich sichtbare Verschiedenheiten zeigt. Aus diesen Verhältnissen läßt sich aber natürlich kein Einwand gegen die Lehre von der spezifischen Energie der lebendigen Substanz und das aus ihr entspringende Gesetz der Reizwirkungen ableiten. Die spezifische Energie der lebendigen Substanz ist nicht für einen gegebenen Organismus etwas Unveränderliches, sie bleibt nicht dieselbe das ganze Leben lang, sondern sie ändert sich mit der Entwicklung; die spezifische Energie ist nichts weiter als ein Ausdruck für ein bestimmtes System von Bedingungen. Aendert sich etwas in diesem System, so heißt das nichts anderes als es ändert sich seine spezifische Energie, mit anderen Worten, die Art des Reizerfolgs, den das System bei gleichartiger Reizung liefert. Die spezifische Energie irgendeiner gegebenen Form der lebendigen Substanz ist also etwas Relatives, das abhängig ist von dem gerade gegebenen Zustande des betreffenden Systems und nur in bezug auf diesen momentan gegebenen Zustand besteht die Gesetzmäßigkeit, daß alle Reize primär die spezifischen Lebensprozesse quantitativ verändern, indem sie dieselben erregen oder lähmen. In diesem Sinne sind alle Reize gewissermaßen „Katalysatoren“, die den Ablauf der spezifischen Lebensvorgänge entweder beschleunigen oder verzögern. Das ist das allgemeine Gesetz der Reizwirkungen.