Sechstes Kapitel. Vom Mechanismus des Lebens. (continued 4)
Reading edition
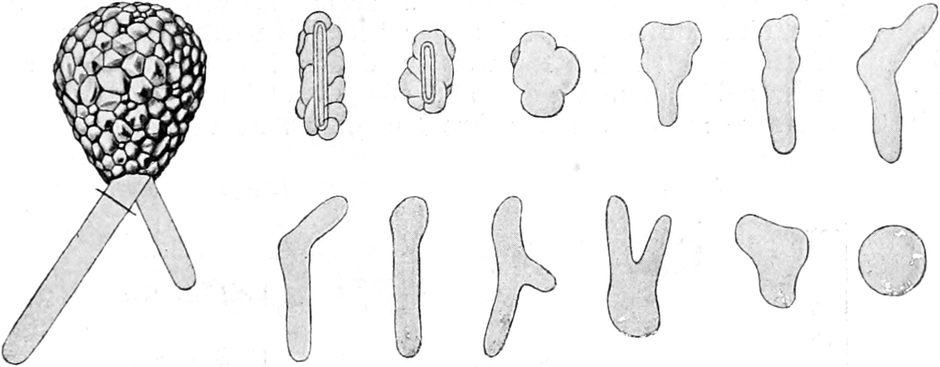
Fig. 303.
Difflugia lobostoma mit zwei aus dem Sandgehäuse tretenden Pseudopodien, von denen das größere durch einen Schnitt abgetrennt wird
. Daneben von links oben bis rechts unten die Veränderungen, welche die abgeschnittene Protoplasmamasse im Verlauf einiger Stunden durchmacht. Zuerst normale Bewegung durch Pseudopodienbildung, schließlich Absterben in der Kugelform.
Auf Grund dieser Vorstellung würden wir uns etwa folgendes Bild von dem Mechanismus der amöboiden Protoplasmabewegung machen können. Gehen wir aus von der Kugelform der amöboiden Zelle, so würde durch die chemische Einfügung des Sauerstoffs in das Protoplasma an einer beliebigen Stelle der Peripherie die Oberflächenspannung lokal herabgesetzt werden, das Protoplasma würde sich vorbuchten, und da hierdurch immer neue Protoplasmamassen mit dem Sauerstoff des umgebenden Mediums in Berührung kämen, würde sich je nach der eigentümlichen Beschaffenheit des Protoplasmas ein mehr oder weniger langes Pseudopodium bilden. Das wäre die Mechanik der Expansionsphase. Durch die Einfügung des Sauerstoffs hätte dann die lebendige Substanz den Höhepunkt ihrer labilen Konstitution erreicht. Sie würde in gewissem Grade schon spontan zerfallen, in höherem Maße aber bei Einwirkung dissimilatorisch erregender Reize. Mit ihrem Zerfall würde die Oberflächenspannung wieder größer, und so müßte das gereizte Protoplasma in zentripetaler Richtung wieder zurückfließen, so daß das Pseudopodium sich einzöge, ein Vorgang, der ja durch die verschiedensten Reize in so überaus charakteristischer Weise hervorgerufen wird. Das wäre die Mechanik der Kontraktionsphase. Nach ihrer Rückkehr zum zentralen Zellkörper hätten die Protoplasmamassen Gelegenheit, sich mit Hilfe der vom Protoplasma und Zellkern produzierten Stoffe, die zum intakten Leben der Zelle unumgänglich notwendig sind, wieder zu regenerieren, um dann nach Einfügung des Sauerstoffs ihren Weg von neuem zu beginnen.
Durch den Aufbau und Zerfall der Biogenmoleküle würden diese abwechselnden Veränderungen in der Kohäsion des Protoplasmas, die zur Entstehung der Expansions- oder Kontraktionsphase führen, vollkommen verständlich werden, mag man nun die Einfügung des Sauerstoffs in das Biogenmolekül selbst als den kohäsionsherabsetzenden und den oxydativen Zerfall des Biogenmoleküls als den kohäsionserhöhenden Faktor annehmen oder mag man die Kohäsionsverminderung erst mit der Oxydation der Zerfallsprodukte des Biogenmoleküls und die Kohäsionserhöhung mit der Entstehung dieser Produkte verbunden denken.
Auf Grund der hier entwickelten Vorstellung werden ferner alle speziellen Vorgänge, die sich bei der Bewegung amöboider Protoplasmamassen zeigen, verständlich. Vor allem erklären sich daraus auch ohne weiteres die Nekrobiose-Prozesse nackter Protoplasmamassen, wie man sie z. B. bei den abgeschnittenen, kernlosen, hyalinen Pseudopodien von Difflugien etc. sehr schön verfolgen kann (Fig. 303): das anfängliche Fortbestehen der amöboiden Bewegung, das allmähliche Aufhören der Pseudopodienbildung und endlich das Absterben im kugeligen Kontraktionszustande[772]. Anfangs, gleich nach dem Abschneiden der Masse, stehen noch eine Menge der Kern- und Protoplasmastoffe, welche die Biogenmoleküle zu ihrer Regeneration brauchen, im Protoplasma zur Verfügung. Die Ausstreckung und Einschmelzung der Pseudopodien geht daher anfangs wie vorher noch ungestört weiter. Allmählich werden diese Stoffe aber verbraucht, die Biogenmoleküle zerfallen, die Pseudopodien ziehen sich ein, die Regeneration der Biogene wird unmöglich, die Sauerstoffaufnahme sinkt. Es werden daher keine neuen Pseudopodien mehr gebildet, und wenn alle Biogenmoleküle zerfallen sind, stirbt die Masse ab, ohne mehr ihre Kugelform zu verändern.
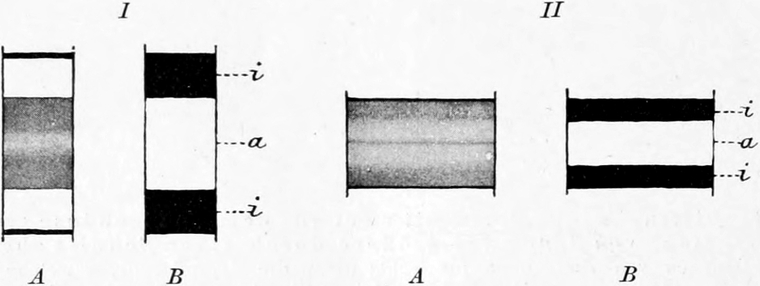
Fig. 304.
Muskelsegmente in der Ruhe und in der Kontraktion
.
I
In der Ruhe,
II
in der Kontraktion;
A
in gewöhnlichem,
B
in polarisiertem Licht.
a
Anisotrope,
i
isotrope Schichten.
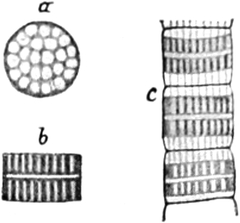
Fig. 305.
Muskelsegmente von der Wespe mit den Röhrchen der anisotropen Substanz
.
a
Anisotrope Schicht von oben gesehen,
b
von der Seite,
c
drei Muskelsegmente. Nach S
CHÄFER
.
Die hier entwickelte Vorstellung vom Mechanismus der amöboiden Protoplasmabewegung hat aber zugleich auch den großen Vorteil, daß sich ihre Prinzipien unter Berücksichtigung der besonderen Verhältnisse im einzelnen Falle auf sämtliche andere Kontraktionsbewegungen, auf die Protoplasmaströmung in den Pflanzenzellen ebenso wie auf die Flimmerbewegung und auch auf die Muskelbewegung anwenden lassen. Wir wollen hier nur noch den kompliziertesten Fall, die Bewegung der quergestreiften Muskeln, kurz herausgreifen. Beim Muskel müssen wir das einzelne Muskelsegment ins Auge fassen, denn der Bewegungsvorgang spielt sich schon an jedem einzelnen Muskelsegment ab. Wie wir bereits früher sahen[773], besteht das Muskelsegment aus zwei verschiedenen Substanzen, der in der Mitte gelegenen, festeren anisotropen Substanz und der zu beiden Seiten der letzteren aufgelagerten isotropen Substanz (Fig. 304). Die mikroskopisch sichtbaren Veränderungen bei der Kontraktion und Expansion, wie sie ENGELMANN[774] u. a. bis in die Einzelheiten festgestellt haben, bestehen im wesentlichen darin, daß bei einer auf Reizung erfolgenden Kontraktion isotrope Substanz von beiden Seiten in die anisotrope hineinfließt, so daß die anisotrope an Volumen zunimmt. Dadurch nimmt die Höhe des ganzen Segments ab, die Breite dagegen zu. Dabei ist die Tatsache beachtenswert, die E. A. SCHÄFER[775] fand, daß die anisotrope Substanz, die ihren Ort nicht verändert, durch das bereits früher[776] erwähnte Röhrchensystem (Fig. 305) dem Zuflusse der isotropen Stoffe eine möglichst große Oberfläche darbietet. Die so entstehende Formveränderung des Muskelsegments repräsentiert eine Verringerung der Oberfläche bei gleichbleibender Masse im Sinne einer größeren Annäherung an die Kugelgestalt. Stellen wir uns nun vor, daß durch den explosiven Zerfall der Biogene bei der Kontraktion die Kohäsionsverhältnisse im Muskelsegment sich so ändern, daß die Oberflächenspannung des Muskelsegments größer wird, so würde damit die Formveränderung des Segments, d. h. die Kontraktionsphase der Bewegung nach denselben Prinzipien verständlich werden wie die Annahme der Kugelgestalt nach Reizung bei einer Amöbe. Indem dabei isotrope Substanz mit anisotroper Substanz sich mischt, sind für die Restitution der zerfallenen Biogenmoleküle günstige Bedingungen gegeben und nehmen wir an, daß die Sauerstoffzufuhr ohne die ja eine vollständige Erholung des Muskels nicht stattfindet, die Kohäsion wie bei der Amöbe wieder vermindert, so ist damit auch das Verständnis für die Entstehung der Expansionsphase ermöglicht. Mögen sich nun auch die Vorgänge, die sich ja zurzeit noch vollständig unserer Kenntnis entziehen, im einzelnen etwas anders abspielen, jedenfalls scheint das Prinzip der Beeinflussung der Molekularattraktion durch die Veränderungen der chemischen Konstitution der Moleküle, dasselbe Prinzip, das die amöboide Bewegung verständlich macht, auch imstande zu sein, künftig den noch so dunklen Vorgang der Muskelbewegung in seinen wesentlichen Punkten aufzuhellen. Auch BERNSTEIN[777] übrigens, der sich früher dieser Auffassung der Muskelkontraktion nicht angeschlossen hatte, ist in neuester Zeit zu dem Ergebnis gelangt, daß die Muskelkontraktion auf der Entwicklung einer durch chemische Prozesse erzeugten Oberflächenenergie beruhe. Er nimmt dabei als Entstehungsort der erhöhten Oberflächenspannung in der Muskelfaser die Grenzfläche zwischen der Substanz der Primitivfibrillen und des Sarkoplasmas an. Mag das zutreffen oder nicht, jedenfalls handelt es sich um das gleiche Prinzip der Umsetzung von chemischer Energie in Oberflächenenergie.
Hier mündet aber unsere Betrachtung des Mechanismus der Kontraktionsbewegungen von selbst wieder in unsere Vorstellung von dem Energiewechsel bei der Muskeltätigkeit ein, und wir sind wieder zu derselben Auffassung gelangt, die wir auf einem ganz anderen Wege bereits gewonnen hatten, daß nämlich die Tätigkeit des Muskels auf dem Wechsel von Zerfall und Regeneration der lebendigen Protoplasmateilchen beruht.
** *
Wir stehen jetzt am Ende unserer Untersuchungen über die Mechanik des Zelllebens. Ausgehend von der Vorstellung, daß im Stoffwechsel der eigentliche Lebensvorgang liegt, dessen Ausdruck die mannigfachen Lebensäußerungen sind, mußten wir die elementaren Lebensäußerungen der Zelle auf die Kette der Stoffwechselvorgänge, durch welche die einzelnen Teile der Zelle untereinander und mit der Außenwelt verbunden sind, zurückzuführen suchen, und gerade unsere letzten Erörterungen über die Bewegungsvorgänge an der Zelle liefern uns das beste Beispiel dafür, wie die Vorgänge des Formwechsels und Energiewechsels untrennbar mit den Vorgängen des Stoffwechsels verknüpft sind, wie alle drei in Wirklichkeit ein einziges Ganzes bilden, das nur der Betrachtung verschiedene Seiten bietet. Soweit es unsere wissenschaftlichen Erfahrungen bisher ermöglichen, haben wir unsere Aufgabe zu lösen gesucht. Freilich hat dabei manche Vermutung, manche Hypothese die weiten Zwischenräume zwischen den bisherigen Kenntnissen ausfüllen müssen, und manche empfindliche Lücke bleibt trotzdem noch offen. Aber die Zellularphysiologie ist eben erst im Entstehen begriffen, und die eiserne Notwendigkeit ihrer Entwicklung, verbunden mit ihrer großen Leistungsfähigkeit, ermutigen zu den höchsten Erwartungen.
III. Die Verfassungsverhältnisse des Zellenstaates.
Hat bis jetzt bei allen unseren Untersuchungen und Experimenten, Erörterungen und Theorien immer die einzelne Zelle als selbständiger Elementarorganismus im Vordergrunde des Interesses gestanden, so bleibt uns nunmehr am Ende des langen Weges, den wir im Verfolg des physiologischen Problems zurückgelegt haben, noch übrig, wenigstens in Kürze auf den Mechanismus einzugehen, der aus dem Zusammenleben der Zellen im Zellenstaate resultiert. Das Leben des vielzelligen Organismus ist die Resultante aus dem Leben der einzelnen Zellen, die seinen Zellenstaat zusammensetzen, aber durch das Zusammenleben und die daraus entspringende gegenseitige weitgehende Beeinflussung der einzelnen Zellen sind mancherlei besondere Verhältnisse bedingt, die in den Lebensäußerungen des vielzelligen Organismus einen charakteristischen Ausdruck finden.
A. Selbständigkeit und Abhängigkeit der Zellen.
Wir haben an einer anderen Stelle gesehen, daß die Größe der einzelnen Zelle nur eine sehr beschränkte ist und sein kann[778]. Aus dieser Tatsache ergibt sich eine wichtige Konsequenz. Ein größerer Organismus kann niemals von einer einzigen Zelle gebildet werden, die Entstehung eines größeren Organismus ist vielmehr nur möglich durch Aufbau aus vielen einzelnen Zellen. In der Tat wissen wir ja, daß alle größeren Organismen Zellenstaaten sind. Aber durch die Vereinigung mit anderen ihresgleichen sind Verhältnisse gegeben, die das Leben der einzelnen Zelle wesentlich modifizieren, so daß sich die Lebensäußerungen der Zelle anders gestalten, als wenn sie frei lebte. Wie jede Staatenbildung erfordert auch die Bildung des Zellenstaates einen Kompromiß zwischen den einzelnen Individuen. Ohne einen solchen Kompromiß ist keine Staatenbildung denkbar. Der Kompromiß besteht darin, daß jede Zelle ein Stück ihrer Selbständigkeit aufgibt für den Gewinn, den sie aus dem Zusammenleben mit anderen Zellen zieht. Die spezielle Form dieses Kompromisses zwischen den einzelnen Kontrahenten ist aber im gegebenen Fall ungeheuer verschieden. Wir finden in den Zellenstaaten der Organismenreihe noch viel mannigfachere Verfassungsformen verwirklicht, als wir sie in der menschlichen Gesellschaft entwickelt sehen, und es würde eine überaus lohnende Aufgabe sein, die moderne Soziologie einmal unter Berücksichtigung der tatsächlichen Verfassungsformen verschiedener Zellenstaaten zu behandeln. Es würden zweifellos manche soziale Reformvorschläge ganz anders ausfallen, als wir sie jetzt bisweilen vernehmen.
Selbstverständlich kann ein Zellenstaat nur leben, wenn seine einzelnen Konstituenten ein eigenes Leben führen, denn das Leben des Zellenstaates ist nur der Ausdruck des Lebens der einzelnen Zellen. Außer den Zellen ist nichts Lebendiges im Zellenstaat. Die selbständige Lebenstätigkeit der einzelnen Zelle ist also unumgängliche Vorbedingung für das Leben des zusammengesetzten Organismus. Wie viel aber die einzelne Zelle von ihrer Selbständigkeit aufgibt, dadurch, daß sie sich mit anderen vereint, das unterliegt einer enormen Mannigfaltigkeit. Etwas muß sie immer aufgeben, das ist ohne weiteres klar, wenn wir daran denken, daß durch das Zusammenleben verschiedener Zellen die äußeren Lebensbedingungen für die einzelne Zelle in hohem Grade verändert werden. Ja, Zellen, die das freie Einzelleben dauernd mit dem Leben im Zellenstaate vertauscht haben, wie die Gewebezellen der höheren Pflanzen und Tiere, gehen sogar meistens in kurzer Zeit zugrunde, wenn sie aus dem Verband mit ihren Genossinnen getrennt werden. Die übrigen Zellen des Zellenstaates sind eine äußere Lebensbedingung für die Gewebezelle geworden.
Dieses Abhängigkeitsverhältnis, in dem die Zellen des Zellenstaates zueinander stehen, ist im allgemeinen um so geringer und die Selbständigkeit der einzelnen Zelle um so größer, je tiefer wir in der Organismenreihe hinabsteigen, je mehr noch die einzelnen Zellen des Zellenstaates einander gleichen.
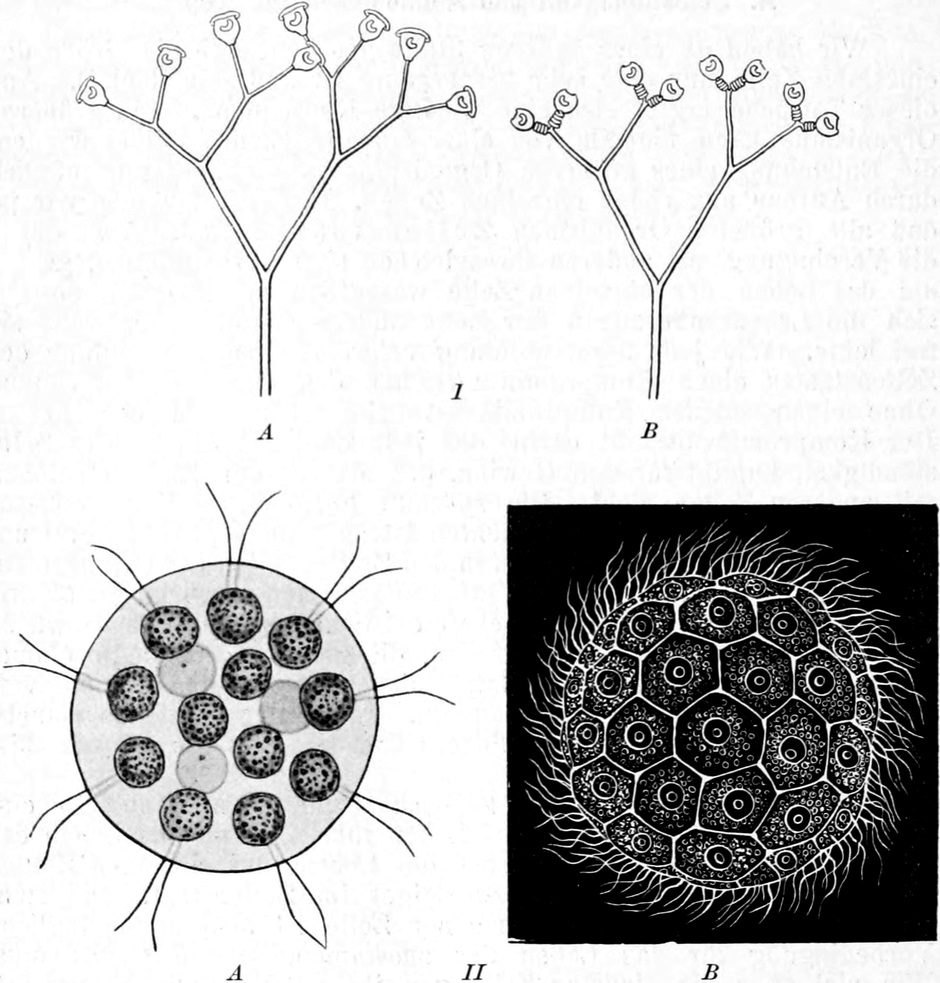
Fig. 306.
I
Carchesium polypinum
, ein Ciliatenstock.
A
Die einzelnen Individuen auf ihren Stielen sind ausgestreckt.
B
Die einzelnen Individuen sind infolge einer Erschütterung zusammengezuckt.
II
A
Eudorina elegans
, eine Flagellatenkolonie.
B
Magosphaera planula
, eine Ciliatenkolonie. Nach H
AECKEL
.
Die einfachsten Verhältnisse haben wir im Reiche der Protisten. Hier finden wir noch Zellenstaaten mit dem Urtypus einer echt republikanischen Verfassung, Zellenstaaten, in denen jede Zelle der anderen tatsächlich noch gleich ist und die Fähigkeit besitzt, auch unabhängig von den anderen allein für sich zu existieren. Ein Carchesiumstöckchen (Fig. 306 I), eine Eudorinakolonie (Fig. 306 II), eine Magosphaerakugel (Fig. 306 II) sind solche wahren Zellenrepubliken. Bisweilen trennen sich die Mitglieder dieser Staaten voneinander und führen ein unabhängiges Leben weiter. Aber solange sie im Staate miteinander vereint sind, besteht selbst in diesen echt republikanischen Zellenstaaten trotz der hohen Selbständigkeit der einzelnen Zellen ein gewisses Abhängigkeitsverhältnis. Das einzelne Carchesium wird durch seine Nachbarn beeinflußt. Zuckt einer seiner Nachbarn plötzlich zusammen, so wird es durch die Erschütterung ebenfalls zu einer Zuckung veranlaßt. Die einzelne Eudorina- oder Magosphaerazelle ist ebenfalls in ihrer Bewegung abhängig von den anderen. Der Schlag ihrer Wimpern treibt sie nicht hin, wo sie bei freier Beweglichkeit hinschwimmen würde, sondern er ist nur eine der vielen Komponenten, aus denen die Bewegung der ganzen kugeligen Kolonie resultiert.
Viel größer als in diesen wahren Zellenrepubliken des Protistenreiches ist aber die Abhängigkeit der Zellen schon in den Zellenstaaten der Pflanzen und der niedrigsten, in sozialer Beziehung mit ihnen auf gleicher Stufe stehenden Cölenteraten. Man hat auch die Verfassung der Pflanzen noch als eine republikanische bezeichnet im Gegensatz zu der mehr monarchischen Verfassung der Tiere. Das ist richtig; allein die Verfassung des Zellenstaates der Pflanzen, Schwämme, Hydroidpolypen ist nicht mehr die primitive Form der Republik, wie wir sie bei den Protistenkolonien sahen. Wir finden hier schon nicht mehr die Fähigkeit der einzelnen Zelle, aus der Gemeinschaft der anderen getrennt selbständig für sich existieren zu können. Die Abhängigkeit von den anderen Zellen ist schon zu groß. Dagegen können kleinere Gruppen von Zellen sich noch selbst erhalten und gesondert weiter leben. Man kann z. B. die Blätter mancher Pflanzen, wie VÖCHTING[779] gezeigt hat, in winzig kleine Stücke zerhacken und aus dem Brei wieder ganze Pflanzen züchten, und ebenso lebt jedes Stück einer zerschnittenen Hydra, wie wir sahen, selbständig weiter (Fig. 2 p. 66).
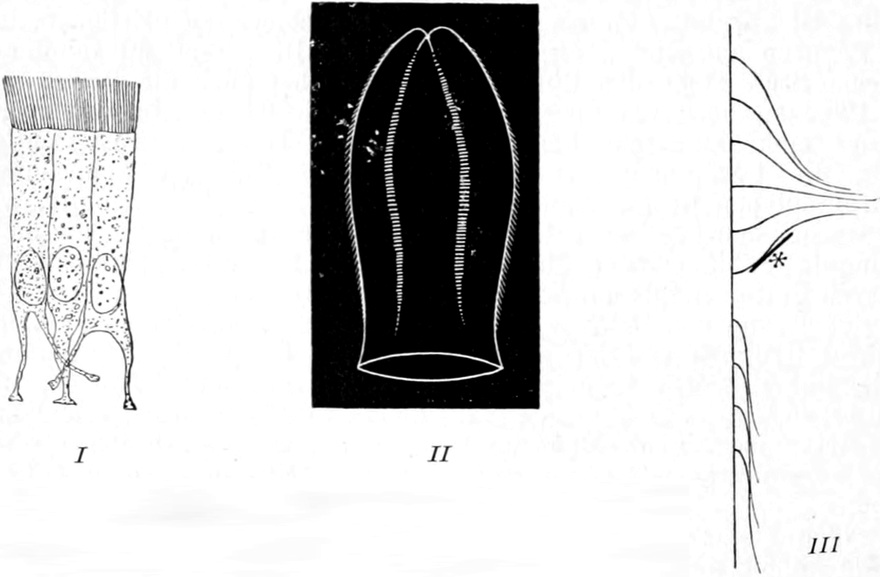
Fig. 307.
Flimmerepithel
.
I
Drei aneinanderhängende Flimmerzellen aus dem Nebenhoden. Nach S
CHIEFFERDECKER
.
II
Beroe ovata mit den vier Flimmerplättchenreihen der einen Seite.
III
Flimmerreihe einer Beroe von der Seite. Das Plättchen bei * ist mit einer feinen Lanzette durch Zurückbiegen fixiert, so daß es nicht schlagen kann. Infolgedessen laufen die Wimperwellen von oben her nur bis zu diesem Plättchen, während die davon abwärts gelegenen Plättchen stillstehen.
Noch enger als bei den Pflanzen und niedrigsten Cölenteraten ist die Abhängigkeit der einzelnen Zellen voneinander in manchen Geweben der höheren Tiere. Hier herrscht vielfach eine ausgesprochene Despotie. Ein interessantes Beispiel liefert die Verfassung der Flimmerepithelien. Bekanntlich besteht ein Flimmerepithel aus vielen nebeneinanderliegenden Reihen hintereinander angeordneter Flimmerzellen, deren jede eine Anzahl Flimmerhaare besitzt (Fig. 307 I). Die Flimmerhaare dieser Zellen sind in einem schnellen, rhythmischen Schwingen begriffen. Dabei fällt aber in die Augen, daß die Flimmerbewegung der einzelnen Zellen einer Reihe nicht regellos und unabhängig voneinander erfolgt, sondern daß eine Metachronie des Wimperschlages besteht[780], in der Weise, daß die Flimmerhaare sämtlicher Zellen, von der obersten Zelle der Reihe angefangen, in regelmäßiger Reihenfolge hintereinander schlagen. Viel besser als am mikroskopischen Flimmerepithel der Wirbeltiere kann man übrigens diese Tatsache an den Flimmerplättchenreihen der Ctenophorenrippen beobachten (Fig 307 II). Hier, wo die Flimmerplättchen mit bloßem Auge sehr deutlich zu sehen sind, und wo die Bewegung oft sehr langsam abläuft, bemerkt man ohne weiteres, daß jedes Plättchen nur schlägt, wenn das vorhergehende geschlagen hat, und dann wieder in Ruhe bleibt, bis vom ersten Plättchen her eine neue Schlagwelle kommt. Schneidet man aus einer Beroe eine solche Rippe mit dem darunter liegenden Gewebe heraus, so hat man eine Flimmerreihe in übersichtlichster Form. Beim obersten Plättchen beginnt die Bewegung und pflanzt sich fort auf alle folgenden. Ist das oberste Plättchen in Ruhe, so sind es auch alle folgenden, nie schlägt ein Plättchen in der Mitte der Reihe, während die vorhergehenden in Ruhe sind. Hält man ein Plättchen mitten in der Reihe fest, so laufen die Flimmerwellen von oben her nur bis zu diesem Plättchen, hier bleiben sie stehen und alle Plättchen abwärts in der Reihe stehen still (Fig. 307 III). So steht also jedes Plättchen in engstem Abhängigkeitsverhältnis von dem nächstoberen und kann sich niemals selbständig bewegen. Alle Plättchen aber werden auf diese Weise von dem ersten Plättchen der Reihe in ihrer Bewegung bestimmt (Fig. 308 A). Trotzdem besitzt jedes Plättchen in potentia noch eine volle Selbständigkeit. Schneidet man z. B. die Reihe durch, so übernimmt das Plättchen, das jetzt als erstes in der Reihe steht, die Führung und beherrscht durch seinen Schlag und seine Ruhe die sämtlichen abwärts in der Reihe stehenden Plättchen, so daß die beiden getrennten Hälften der Reihe nun in gesondertem Rhythmus schlagen (Fig. 308 B). Ja, jedes einzelne aus der Reihe herausgenommene Plättchen, vorausgesetzt, daß noch die zu ihm gehörigen Zellkörper daran haften, schlägt selbständig in rhythmischer Weise für sich. Wir haben hier einen interessanten Fall vollständiger Subordination. Jede Flimmerzelle eines Epithels besitzt isoliert, solange sie am Leben bleibt, vollkommene Autonomie ihrer Bewegung, im Verbande mit ihresgleichen dagegen hat sie die Selbständigkeit ihrer Bewegung vollkommen aufgegeben. Dieses Verhältnis ist unumgänglich nötig für das Zustandekommen eines metachronen Flimmerschlages, der in motorischer Beziehung wesentliche Vorteile bietet. Daher finden wir auch dasselbe Verhältnis nicht bloß zwischen den einzelnen Flimmerzellen eines Epithels, sondern auch schon zwischen den einzelnen Flimmerhaaren einer Zelle. In einer langen Reihe von Flimmerhaaren, wie sie z. B. bei Wimperinfusorienzellen besonders deutlich zu sehen sind, besteht dieselbe Metachronie des Schlages. Kein Flimmerhaar schlägt, ehe das vorhergehende geschlagen hat. Steht das oberste still, so steht die ganze Reihe still. Und dennoch zeigt auch hier jedes einzelne Haar, aus dem Zusammenhang mit den anderen getrennt, vollkommene Selbständigkeit der Bewegung. Schneidet man z. B. bei Spirostomum die lange Peristomwimperreihe an einer Stelle ein, so können beide Hälften unabhängig voneinander schlagen[781]. Ja, trennt man ein einzelnes Wimperhaar mit einem Tröpfchen daran hängenden Protoplasmas vom Zellkörper ab, so schlägt es rhythmisch selbständig weiter, bis es zugrunde geht. Wir müssen also annehmen, daß die vollständige Abhängigkeit, in der das einzelne Flimmerhaar ebenso wie die einzelne Flimmerzelle von den nächstoberen steht, bedingt ist durch irgendeinen Mechanismus des basalen Protoplasmas, der jede selbständige Bewegung verhindert und nur Impulse von oben her übermittelt[782]. Das ist aber nur möglich, wenn beim Flimmerepithel eine ununterbrochene Kontinuität des basalen Protoplasmas durch die ganze Zellenreihe hin besteht. In der Tat wissen wir auch, daß protoplasmatische Verbindungen zwischen den einzelnen Zellen im Zellenstaat der Pflanzen wie der Tiere weit verbreitet sind.
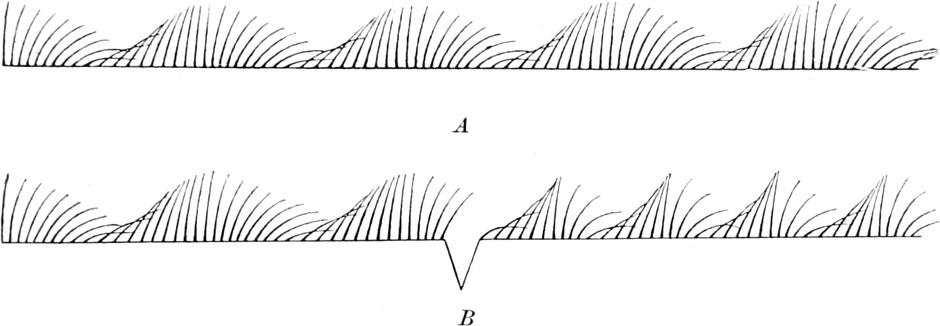
Fig. 308.
A
Intakte Wimperreihe mit ungestörter Metachronie des Schlages. Die oberste (linke) Wimper gibt den Rhythmus an, und die übrigen folgen in demselben Rhythmus nach.
B
Wimperreihe, die in der Mitte durch einen Einschnitt in zwei Hälften getrennt ist. Jede Hälfte schlägt in eigenem Rhythmus.
Die weitgehendste Abhängigkeit aber haben wir schließlich beim höheren Tier in der Herrschaft der Nervenzellen über die Zellen der verschiedenartigsten Gewebe. Je höher wir in der Tierreihe hinaufsteigen, um so mehr sehen wir die Tendenz der Nervenzellen, ihre Herrschaft auf alle Gewebe des Körpers auszudehnen. Dabei geht der Verlust der Selbständigkeit bei vielen Gewebezellen so weit, daß ihre Lebenstätigkeit, solange sie nicht durch Impulse von den Nervenzellen her erregt wird, auf ein Minimum herabsinkt. Die Spontaneität geht vielfach scheinbar ganz verloren. Ein Skelettmuskel führt bei den Wirbeltieren nie mehr spontan eine Zuckung aus, nur allein die Ganglienzellen des Zentralnervensystems können ihn durch ihre Impulse zu einer Kontraktion veranlassen. Freilich dürfen wir uns durch das Fehlen der spontanen Zuckungen beim Muskel nicht verführen lassen, zu glauben, daß die Stoffwechselvorgänge, welche die Muskeltätigkeit charakterisieren, während der Ruhe vollständig stillstehen. Das ist nur scheinbar der Fall. Wie uns der Vergleich des zum Muskel strömenden arteriellen Blutes mit dem aus dem Muskel kommenden venösen Blute lehrt, verlaufen auch während der Ruhe im Muskel dieselben Stoffwechselprozesse wie in der Tätigkeit, aber in so geringem Umfange und so gleichmäßig, daß es nicht zu einer Zuckung kommt. Erfahren sie aber durch Nerveneinfluß eine plötzliche Steigerung, so tritt die Zuckung ein. Ganz analog dem Abhängigkeitsverhältnis der Muskelzellen ist das Verhältnis vieler anderer Gewebezellen, z. B. der Drüsenzellen zum Zentralnervensystem, und sogar das Verhältnis der Ganglienzellen untereinander ist von derselben Art.
Das allgemeine Prinzip, das der Bildung des Zellenstaates und damit der Entstehung eines mehr oder weniger engen Abhängigkeitsverhältnisses der einzelnen Zellen voneinander zugrunde liegt, ist dasselbe Prinzip, das überhaupt alle Entwicklung beherrscht. Es ist das Prinzip der Utilität. Das Zusammenbleiben der Zellen nach der Teilung und damit zunächst die Entstehung eines aus mehreren gleichartigen Zellen bestehenden Staates, wie wir sie bereits im Protistenreich finden, hat schon den Vorteil des größeren Schutzes für die einzelne Zelle. Durch das bloße Zusammenbleiben der Zellen ist aber, wie wir sahen, schon ein gewisses Abhängigkeitsverhältnis der einzelnen Zellen voneinander bedingt. Daß dieses Abhängigkeitsverhältnis, je weiter wir in der Entwicklungsreihe der Organismen aufwärts steigen, um so enger und fester wird, ist wiederum ein Ausdruck des Utilitätsprinzips: denn je größer die Einheitlichkeit in der Verwaltung des ganzen Zellenstaates, um so sicherer und größer ist nicht nur die Leistung des Ganzen, um so größer ist auch der Nutzen, den die einzelne Zelle von dem Zusammenleben hat. Die Einheitlichkeit der Verwaltung des Zellenstaates wird aber durch das Abhängigkeitsverhältnis der einzelnen Zelle von den übrigen Zellen wesentlich bestimmt. Wie schließlich derartige nutzenbringende Einrichtungen sich auf natürliche Weise entwickeln müssen, dafür hat uns die Selektionstheorie DARWINs, die das Problem aller Zweckmäßigkeit in der organischen Welt zuerst naturwissenschaftlich behandelt hat, ein allgemein mechanisches Verständnis zu liefern gesucht. Freilich sind die speziellen mechanischen Bedingungen in jedem einzelnen Falle immer erst näher zu untersuchen.
B. Differenzierung und Arbeitsteilung der Zellen.
In der Entwicklung eines Abhängigkeitsverhältnisses der Zellen voneinander bei der Entstehung des Zellenstaates haben wir nur eine Folge des Zusammenlebens der Zellen kennen gelernt. In der Tat kann das auch die einzige Folge bleiben, solange der Zellenstaat gewisse Dimensionen nicht überschreitet. Wird aber der Zellenstaat nach allen Dimensionen größer, entwickelt er sich zu einer kompakten Masse, so macht sich eine andere notwendige mechanische Folge des Zusammenlebens bemerkbar, das ist die Differenzierung und Arbeitsteilung der Zellen.
Die Differenzierung der Zellen besteht bekanntlich darin, daß die Zellen verschiedenartige Charaktere annehmen, so daß ein Zellenstaat entsteht, der nicht mehr aus gleichartigen Zellen zusammengesetzt ist, sondern aus Zellen und Zellgruppen verschiedener Art. Damit sind nicht nur morphologische, sondern selbstverständlich auch physiologische Unterschiede zwischen den einzelnen Zellen des Staates gegeben, d. h. die Leistungen der einzelnen Zellgruppen werden verschieden, und es findet eine Arbeitsteilung der einzelnen Zellen oder Zellgruppen statt. Differenzierung und Arbeitsteilung sind voneinander untrennbar.
Die mechanischen Bedingungen der Zellendifferenzierung im Zellenstaat liegen ziemlich klar zutage. Wir wissen, daß die sämtlichen Eigenschaften eines Organismus Ausdruck der Wechselwirkung zweier Faktoren sind, nämlich der Beziehungen zwischen seinen inneren und äußeren Lebensbedingungen[783]. Verändert sich einer dieser beiden Faktoren, so ist damit auch eine Veränderung der Eigenschaften des Organismus verknüpft. Stellen wir uns daher eine Zelle vor, die sich durch fortgesetzte Teilung in lauter kleine Nachkommen teilt, und nehmen wir an, daß alle diese Nachkommen zusammenbleiben und einen Zellenstaat bilden, so werden sämtliche Konstituenten dieses Zellenstaates, die aus den fortgesetzten Teilungen hervorgehen, einander immer gleich bleiben, solange die äußeren Bedingungen, unter denen jede Zelle steht, dieselben sind, wie für jede andere. Solche Zellenstaaten haben wir im Protistenreich bereits kennen gelernt. Aber ein solcher Staat ist nur möglich, wenn die Zellen alle linien- oder flächenartig nebeneinander geordnet sind. Das ist in der Tat hier der Fall. Die größten, aus gleichartigen Zellen zusammengesetzten Zellenstaaten, die wir unter den Protisten kennen, die bereits zu den Pflanzen hinüber führen, die Algen, sind entweder Fäden, wie die Konferven (Fig. 309), oder blattartige Gebilde, wie die mächtigen Ulvaceen, bei denen in einer Fläche Zelle an Zelle gereiht ist, so daß der Teil ihrer Oberfläche, welcher frei bleibt, und der Teil, welcher von den Nachbarn begrenzt wird, in jeder Zelle derselbe ist. So steht jede Zelle unter den gleichen äußeren Lebensbedingungen. Denken wir uns aber, daß die aus der Teilung einer Zelle hervorgehenden Zellen nicht sämtlich unter den gleichen äußeren Bedingungen bleiben, so müssen sich mit der Zeit Verschiedenheiten herausbilden, falls nicht die Zellen zugrunde gehen. Dieser Fall ist realisiert bei der Bildung eines jeden Zellenstaates, dessen Zellenarten nicht flächenhaft angeordnet sind, sondern sich als größere solide Komplexe nach allen Seiten des Raumes verteilen. Hier stehen die Zellen, die im Inneren des massigen Zellenstaates liegen, unter völlig anderen äußeren Lebensbedingungen als die Zellen an der Oberfläche. Infolgedessen müssen sie auch morphologisch und physiologisch in einen Gegensatz zu den letzteren treten, so daß eine Differenzierung und Arbeitsteilung erfolgt. Die einfachsten Beispiele dafür haben wir ebenfalls schon in gewissen Formen der Protisten, die so ein äußerst interessantes Uebergangsglied zu den Zellenstaaten der Pflanzen oder der Tiere bilden. Eine derartige Organismenform ist z. B. die Protospongia Haeckelii (Fig. 310), eine Kolonie von Geißelinfusorien, die im histologischen Bau eine gewisse Aehnlichkeit mit den niedrigsten Spongien hat. An der Oberfläche einer gallertigen Masse sitzen zahlreiche Kragengeißelzellen, im Innern der Gallertmasse dagegen befinden sich viele amöboide Zellen ohne Geißel. Hier haben wir also eine Differenzierung der im Innern und der an der Oberfläche lebenden Zellen, die bereits außerordentlich augenfällig ist und deren Genese ohne weiteres auf der Hand liegt. Besonders interessant ist nämlich an dieser Organismenform, daß man an ihr deutlich beobachten kann, wie die Differenzierung nur so lange existiert, als die beiden Zellarten unter verschiedenen Bedingungen stehen. Die amöboiden Zellen des Innern haben nämlich die Fähigkeit, an die Oberfläche zu wandern, und in diesem Falle entwickeln sie sich ebenfalls zu Kragengeißelzellen. Bei diesen niedrigsten Formen des differenzierten Zellenstaates besitzen also die einzelnen Zellen noch die Fähigkeit der Umwandlung in andere Formen im höchsten Maße.
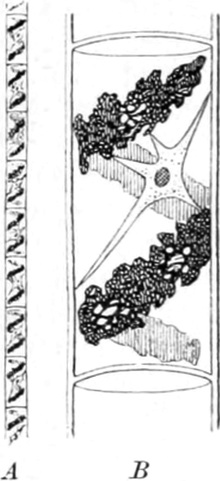
Fig. 309.
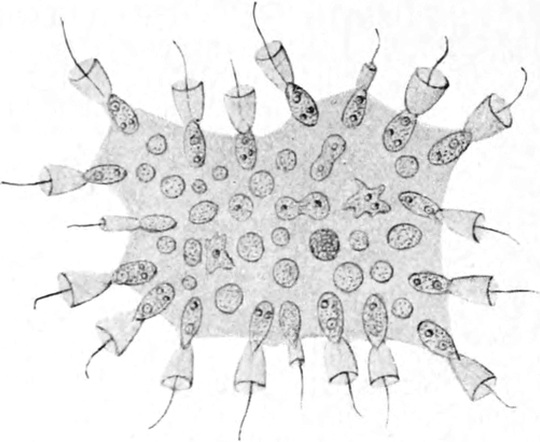
Fig. 310.
Fig. 309. Spirogyra, eine vielzellige Alge des Süßwassers. A Stück eines vielzelligen Fadens. B Einzelne Zelle. Der Chlorophyllkörper zieht sich in jeder Zelle spiralig längs der inneren Zellwand hin.
Fig. 310. Protospongia Haeckelii. Nach LANG.
Was wir im Protistenreiche nur in den ersten Andeutungen finden, die Differenzierung der Zellen durch Anpassung an die durch verschiedenartige Lagerung gegebenen äußeren Bedingungen, das ist für den Aufbau des pflanzlichen und tierischen Zellenstaates das fundamentale Prinzip, das in weitgehendem Maße und bis in die feinsten Einzelheiten hinein verwirklicht ist, und das schließlich zum Aufbau eines so komplizierten Organismus führt, wie ihn der Zellenstaat des menschlichen Körpers bildet. Die ganze Entwicklung des kompliziertesten Tierkörpers mit allen seinen Differenzierungen beruht allein auf dem Prinzip, daß die aus fortgesetzter Teilung der Eizelle hervorgehenden Zellen und Zellenhaufen, je weiter die Zellvermehrung fortschreitet, aus dem einfachen mechanischen Grunde ihrer verschiedenartigen relativen Lage, um so verschiedenartigere Wechselbeziehungen miteinander eingehen und um so verschiedenartigere äußere Lebensbedingungen ertragen müssen, so daß sie durch Anpassung an die sich immer mehr verändernden äußeren Verhältnisse schließlich in allen ihren Eigenschaften immer mehr divergieren und sich differenzieren. Die Mechanik der ontogenetischen Entwicklung durchläuft hier, wie wir aus dem biogenetischen Grundgesetz wissen, soweit nicht speziellere Anpassungen ins Spiel kommen, im wesentlichen dieselben Wege, welche die Entwicklung der Organismen in der phylogenetischen Formenreihe durchlaufen hat. Die mechanischen Bedingungen für die Differenzierung der Zellen bei der Bildung des Zellenstaates sind offenbar in ihren wesentlichsten Punkten die gleichen bei der Ontogenie wie bei der Phylogenie eines jeden Organismus. Freilich bleibt es noch der embryologischen Forschung der Zukunft vorbehalten, die überaus mannigfaltigen speziellen Verhältnisse, die ebenso verschieden sind, wie die Organismenformen selbst, im einzelnen aufzudecken.
Wenn wir die mechanischen Bedingungen der Zellendifferenzierung im komplizierten Zellenstaat in der Veränderung ihrer Wechselbeziehungen mit der Umgebung suchen müssen, die für jede Zelle und Zellengeneration durch die fortgesetzte Zellteilung gegeben ist, so sind damit auch die Bedingungen für eine Arbeitsteilung der Zellen bei der Entwicklung des Zellenstaates zugleich realisiert[784]. Die Leistung eines jeden vielzelligen Organismus ist Ausdruck der Tätigkeit seiner einzelnen Zellen. Sind die Zellen verschieden, so tragen sie auch in verschiedener Weise zur Gesamtleistung des ganzen Organismus bei. Daß dieses Zusammenarbeiten ein einheitliches und zweckmäßiges werden muß, macht das Prinzip der Selektion verständlich, das alle organische Entwicklung, die phylogenetische in gleicher Weise wie die ontogenetische, beherrscht. Nur solche Zellenstaaten, in denen die aus der fortgesetzten Teilung der Eizelle hervorgehenden Zellengenerationen den speziellen Verhältnissen, unter die sie treten, in zweckmäßiger Weise entsprechen, bleiben am Leben. Alle, bei denen das nicht der Fall wäre, müßten im Kampf ums Dasein durch Selektion zugrunde gehen. Die vollkommenste Zweckmäßigkeit ist aber da, wo die Einzelleistungen der verschiedenen Zellen so ineinandergreifen, daß, obwohl jede Zelle oder Zellgruppe eine andere Leistung zu ihrer Spezialität entwickelt hat, dennoch diese Leistung allen übrigen Zellen, sei es mittelbar oder unmittelbar zu gute kommt, ja für alle übrigen notwendig ist. So wird die außerordentlich weitgehende Differenzierung und erstaunlich feine Arbeitsteilung der einzelnen Zellen und Gewebe im Zellenstaat nach bekannten Prinzipien verständlich.
Infolge der weitgehenden Arbeitsteilung hat jede Zellenart, jedes Gewebe, jedes Organ im vielzelligen Staate eine ganz spezielle Aufgabe, und diese Aufgabe bezeichnet die Physiologie seit alter Zeit als die „physiologische Funktion“ des betreffenden Zellenkomplexes. Alle elementaren Lebensäußerungen, die sich bei den niedrigsten Organismen in der einzelnen Zelle abspielen, können im vielzelligen Organismus als spezielle Funktionen in besonders hohem Grade von bestimmten Zellgruppen entwickelt und in weitestgehender Weise besonderen Zwecken angepaßt werden. So entwickelt sich die Bewegung durch einseitige Ausbildung der Kontraktilität bei den höheren Tieren zur besonderen Funktion der Muskelzellen. So bildet sich die Perzeptionsfähigkeit für bestimmte Reizqualitäten in besonders hohem Grade und spezifischer Form als Funktion der Sinnesorgane aus. So steigert sich die Reizleitungsfähigkeit in erstaunlicher Weise zu der Funktion der Nerven. So erfährt der Vorgang der Sekretion in der Funktion der Drüsenzellen seine höchste Ausbildung etc. Das schließt aber nicht aus, daß jede auch noch so speziell differenzierte Zellenart alle elementaren Lebensäußerungen zeigt, nur wird die eine Lebensäußerung in besonders hohem Grade und spezifischer Art als Spezialität entwickelt. Je mehr aber die Spezialitäten der einzelnen Zellen und Zellgruppen allen Zellen zu gute kommen und die Lebensprozesse derselben unterstützen, um so mehr entwickelt sich ein Zellenstaat, der, wie vor allem der Körper der höheren und höchsten Tiere, einen Mechanismus vorstellt, welcher trotz seines außerordentlich großen Umfanges und seiner ungeheuren Komplikation doch in allen seinen Teilen ein vollkommen einheitliches Zusammenwirken zeigt.
C. Zentralisation der Verwaltung.
Verfolgen wir den letzten Punkt, die Entwicklung einer Einheitlichkeit im Zusammenwirken der Zellen und Gewebe des Zellenstaates, noch etwas genauer, so finden wir, daß in dieser Beziehung außer dem Prinzip der Abhängigkeit und der Differenzierung der Zellen noch ein drittes Prinzip in Betracht kommt: das ist das Prinzip der Zentralisation der Verwaltung. Aber dieses Prinzip ist mit den beiden andern aufs engste verbunden, es ist, unter dem Gesichtspunkte der natürlichen Selektion betrachtet, gewissermaßen eine notwendige Folge der beiden ersteren Momente, die sich um so mehr geltend macht, je mehr diese sich entwickeln.
Je weiter die Differenzierung der Zellen geht, je enger das Abhängigkeitsverhältnis der Zellen voneinander wird, um so mehr macht sich für ein einheitliches Zusammenwirken die Notwendigkeit geltend, daß auch entfernter gelegene Zellen, Gewebe, Organe des Zellenstaates miteinander in Beziehung stehen, ein Verhältnis, das sich durch Selektion in immer tiefer gehender Weise entwickeln muß, je komplizierter der Aufbau des Zellenstaates wird. Dadurch ist aber die Entwicklung einer Zentralisation im Zellenstaate bedingt.
Der erste Schritt in der Richtung zur Zentralisation ist eigentlich schon durch die Arbeitsteilung getan, indem gewisse Zellgruppen oder Organe eine bestimmte Funktion für den gesamten Zellenstaat übernehmen. So wird die betreffende Funktion für den ganzen Körper an einer Stelle zentralisiert, und es entstehen so viel Zentren, als sich Organe für bestimmte Funktionen differenzieren. Diesen ersten Schritt im Sinne einer Zentralisation der Verwaltung finden wir bereits im Zellenstaate der Pflanze. Hier schon ist die Funktion der Stärkesynthese, von der die Ernährung der ganzen Pflanze abhängt, in den grünen Blattzellen zentralisiert. Hier sehen wir ferner die Funktion der Wasseraufnahme, ohne die kein Leben auf die Dauer existieren kann, in den Wurzeln allein lokalisiert, und so fort. Im tierischen Zellenstaate sind ganz entsprechende Lokalisationen vorhanden. So ist die Versorgung der einzelnen Gewebezellen mit Nahrung und Sauerstoff bei den höheren Tieren zentralisiert in der Tätigkeit des Herzens, welches das ernährende und sauerstoffreiche Blut zu allen Zellen der verschiedenen Gewebe und Organe hintreibt.
Im tierischen Zellenstaate ist aber auch der zweite wichtige Schritt zur Zentralisation getan, das ist die Verbindung aller einzelnen Funktionszentra oder Organe untereinander, und zwar durch Entstehung eines Zentralnervensystems mit allen seinen Leitungsbahnen. Dieses Prinzip ist es, das in seiner weiteren und weiteren Ausbildung in der Tierreihe schließlich zu jener weitgehenden Zentralisation führt, wie wir sie im komplizierten Zellenstaate der Wirbeltiere und besonders des Menschen entwickelt finden. Im Zentralnervensystem haben wir ein Zentralorgan, das allein die Funktion ausübt, bestimmte Zellen, Gewebe, Organe mit der Außenwelt und untereinander so zu verbinden, daß ein geordnetes Zusammenwirken derselben möglich ist, und je weiter wir in der Tierreihe aufwärts steigen, um so mehr finden wir, wie das Zentralnervensystem im Sinne einer einheitlichen Verwaltung seine Herrschaft allmählich auf nahezu alle Zellen und Zellenkomplexe des Tierkörpers ausdehnt.
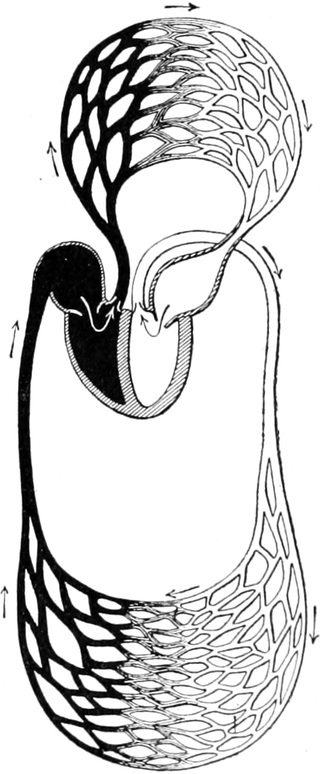
Fig. 311.
Schema des Blutkreislaufs beim Menschen
. Zentralisation der Ernährung aller Zellen im Blutstrom. Die schwarze Hälfte ist das venöse, die helle das arterielle Gefäßsystem. Beide sind durch das Kapillarnetz der Lungen (oben) und der Gewebe (unten) miteinander verbunden. In den Kapillaren umspült der Blutstrom alle Gewebe, deren Zellen aus ihm ihre Nahrung nehmen und an ihn ihre unbrauchbaren Stoffe abgeben. Aus R
ANKE
.
Um uns das Prinzip, das der Mechanik des Zentralnervensystems zugrunde liegt, zu veranschaulichen, ist es am zweckmäßigsten, die einfachste Form seiner Funktion ins Auge zu fassen: den Mechanismus des Reflexes.
Das Wesen des Reflexes besteht darin, daß ein den Reiz perzipierendes und ein den Reiz in zweckmäßiger Weise beantwortendes Element durch ein zentrales Verbindungsstück so untereinander in Beziehung gesetzt werden, daß jeder auf das reizperzipierende Element einwirkende Reiz zum Zentrum und von hier als Impuls für eine Reizreaktion zum ausführenden Element geleitet wird. Ein solcher Mechanismus, in dem jeder am sensiblen Ende eintretende Reiz mit maschinenartiger Sicherheit eine Reaktion am Erfolgsende hervorruft, ist ein „Reflexbogen“.
Die primitivste Form eines Reflexbogens haben wir bereits bei einzelligen Organismen, deren Zellkörper einerseits sensible, anderseits motorische Elemente besitzt und selbst als zentrales Verbindungsstück für beide fungiert. So stellt z. B. ein einzelnes Individuum von Poteriodendron einen solchen Reflexbogen einfachster Art vor (Fig. 312 I). Der auf einem Myoidfaden am Boden eines zierlichen Hüllkelches befestigte Zellkörper besitzt eine Geißel, die außerordentlich sensibel ist. Der geringste Reiz, der auf die Geißel einwirkt, wird zentripetal zum Zellkörper und von hier aus zentrifugal zum Myoidfaden geleitet, so daß der Einwirkung des Reizes auf die Geißel die Kontraktion des Myoidfadens blitzschnell auf dem Fuße folgt. Ganz analog verhält sich z. B. Vorticella, nur daß hier die sensiblen Elemente in Gestalt der Wimpern des Peristomwimpergürtels in der Mehrzahl vorhanden sind. Dieselben Verhältnisse haben wir ferner bei den sogenannten Neuromuskelzellen der Cölenteraten (Fig. 312 II). Hier besitzt ebenfalls eine Zelle auf der einen Seite ein sensibles Element und auf der andern eine kontraktile Faser, die sich kontrahiert, sobald das sensible Endorganoid gereizt wird. Was aber in allen diesen Fällen an einer einzigen Zelle differenziert ist, das ist im Nervensystem der Tiere auf mehrere Zellen verteilt.
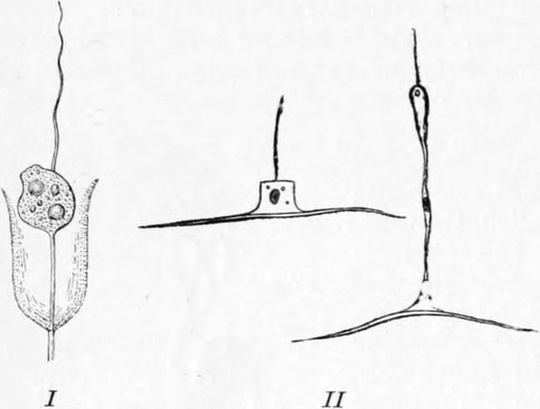
Fig. 312.
Primitiver Reflexbogen an der einzelnen Zelle
.
I
Poteriodendron
, eine Flagellatenzelle in einer kelchförmigen Hülle auf einem Myoidfaden befestigt.
II
Neuromuskelzellen
von einer Actinie.
II
Nach H
ERTWIG
.
Als Paradigma kann hier die einfachste Form des Reflexbogens gelten, die wir im Rückenmark der Wirbeltiere finden. Hier sind es mindestens zwei zentrale Zellen, die zwischen die peripherische Aufnahmezelle und die peripherische Erfolgszelle eingeschaltet sind. Von der Haut entspringt eine sensible Nervenfaser, sei es frei, sei es aus einer Sinneszelle, und läuft zu einer Ganglienzelle in einem neben dem Rückenmark gelegenen Spinalganglion. Diese erste zentrale Ganglienzelle (Fig. 313 A) sendet eine andere Nervenfaser ins Rückenmark hinein, wo sich dieselbe in einen aufsteigenden und einen absteigenden Ast mit zahllosen Nebenästen aufteilt. Irgendein solcher Ast setzt sich dann in Verbindung mit einer zweiten zentralen Ganglienzelle, mit einer motorischen Zelle im Rückenmark, die ihre Nervenfaser dann wieder aus dem Rückenmark heraus zu einer peripherisch gelegenen Muskelzelle sendet. So wird also von der sensiblen Ausgangsstation in der Haut der nervöse Impuls durch eine zentripetale Bahn übertragen zu einer Spinalganglienzelle und von dieser durch ihre intrazentrale Bahn zu einer motorischen Ganglienzelle des Rückenmarks, die ihn auf ihrer zentrifugalen Bahn nach der motorischen Endstation im Muskel weitersendet.
Ebenso wie motorisch kann die Endzelle der zentrifugalen Bahn im gegebenen Falle aber auch sekretorisch oder lichtproduzierend oder auch elektrizitätsentwickelnd sein. So werden auf reflektorischem Wege durch die Ganglienzellen des Zentralnervensystems ganz verschiedene und weit auseinander liegende Teile des Zellenstaates miteinander in Verbindung gesetzt und durch Impulse vom Zentralnervensystem her zur Tätigkeit veranlaßt.
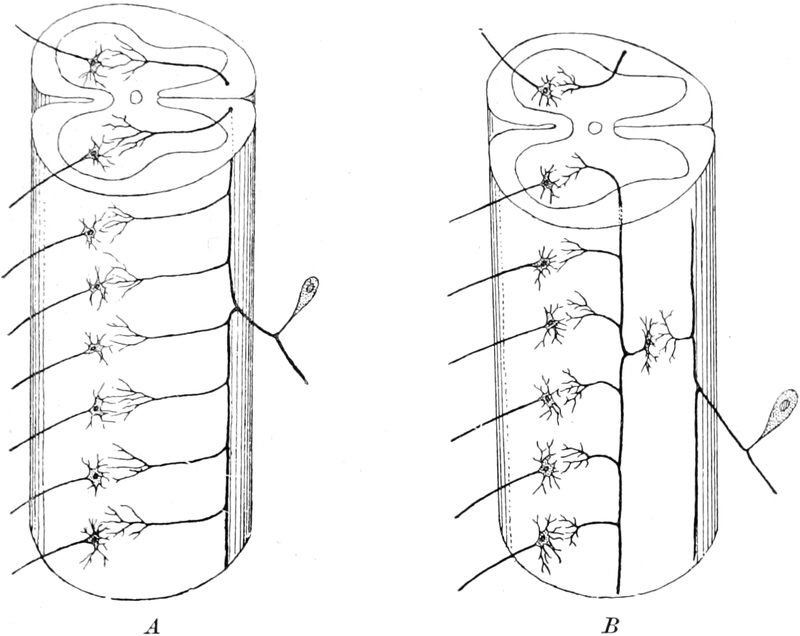
Fig. 313.
Verbindungen der sensiblen und motorischen Bahn im Rückenmark
(Schema).
A
Einfachster Reflexbogen
: rechts die birnförmige, bipolare Spinalganglienzelle, deren zentripetaler Achsenzylinder sich im Rückenmark in seine Kollateralen mit ihren Endverzweigungen auflöst. Die letzteren treten hier direkt an die Dendriten der motorischen Neurone der Vorderhörner des Rückenmarks und verbinden sich mit ihnen per contiguitatem.
B
Komplizierterer Reflexbogen
: zwischen die Endausbreitungen des Spinalganglienneurons und die motorischen Neurone der Vorderhörner des Rückenmarks ist noch ein Schaltneuron eingeschoben, dessen Achsenzylinder sich ebenfalls in zahlreiche Kollateralen mit ihren Endverzweigungen auflöst und seinerseits erst durch die letzteren mit den motorischen Neuronen der Vorderhörner in Kontakt tritt.
Die weiteren Momente, die beim Mechanismus des Zentralnervensystems in Betracht kommen, sind, wenn wir vom Schema des Reflexbogens ausgehen, sehr einfach. Sie bestehen lediglich darin, daß einerseits zwischen sensibles und motorisches Endorgan noch mehr als zwei zentrale Ganglienzellen verschiedener Funktion eingefügt sind (Fig. 313 B), und daß anderseits gewisse Ganglienzellen nicht bloß von einer einzigen Seite, von einer einzigen anderen Ganglienzelle her innerviert werden, sondern von mehreren, unter Umständen von zahlreichen anderen Zellen. So treten die Ganglienzellen und weiter die einzelnen Ganglienzellensysteme vermittels ihrer Nervenfasern in überaus komplizierte und verwickelte Verbindungen untereinander, so daß ein scheinbar unentwirrbares Netzwerk von Ganglienzellen und verbindenden Nervenfasern entsteht, das aber in Wirklichkeit auf das allerfeinste geordnet ist und immer nur ein ganz bestimmtes und einheitliches Zusammenwirken der verschiedenen Teile des Organismus vermittelt, die es untereinander verbindet. Indem einerseits dem Zentralnervensystem von den Sinnesorganen her auf dem Wege der zentripetalen Nervenfasern die Vorgänge in der Außenwelt mitgeteilt werden und indem andererseits vom Zentralnervensystem her, dessen Ganglienzellen bei den Wirbeltieren hauptsächlich im Gehirn und Rückenmark, sowie im sympathischen Nervensystem gelegen sind, die verschiedensten Zellen, Gewebe, Organe des Zellenstaates in zweckmäßiger Weise innerviert werden, entsteht ein zentrales Verwaltungssystem des ganzen Zellenstaates, das durch seine langen Leitungsbahnen selbst die entferntesten Teile des Zellenstaates einer einheitlichen Herrschaft unterwirft (Fig. 314). Man hat daher das Nervensystem sehr anschaulich mit einem Telegraphennetz verglichen, dessen Drähte die entferntesten Regionen eines Landes mit einer zentralen Verwaltungsstelle in Verbindung setzen. In der Tat ist der Vergleich des Zentralnervensystems mit einer großen Telegraphenstation und der Nervenfasern mit den Telegraphendrähten in bezug auf das beiden zugrunde liegende Prinzip der Zentralisation ein sehr glücklicher. Allein man darf denn doch solche Vergleiche nicht zu weit ausspinnen und schließlich in den Nerven wirklich nur noch Leitungsdrähte für Elektrizität erblicken wie das früher vielfach geschehen ist. Die Nervenfasern sind in Wirklichkeit Ausläufer der Ganglienzellen und bestehen ebenso aus lebendiger Substanz wie diese, d. h. sie haben einen Stoffwechsel, mit dem ihr Leben und daher ihre Funktion untrennbar verknüpft ist. Das geht ohne weiteres aus der Tatsache hervor, daß die Nervenfaser nach Abtrennung der Ganglienzelle, zu der sie gehört, als kernlose Protoplasmamasse unfehlbar zugrunde geht, und daß sie in ihrer Erregbarkeit wie Leitfähigkeit, wenn auch in geringerem Grade als die Ganglienzelle, von der Anwesenheit des Sauerstoffs abhängig ist.
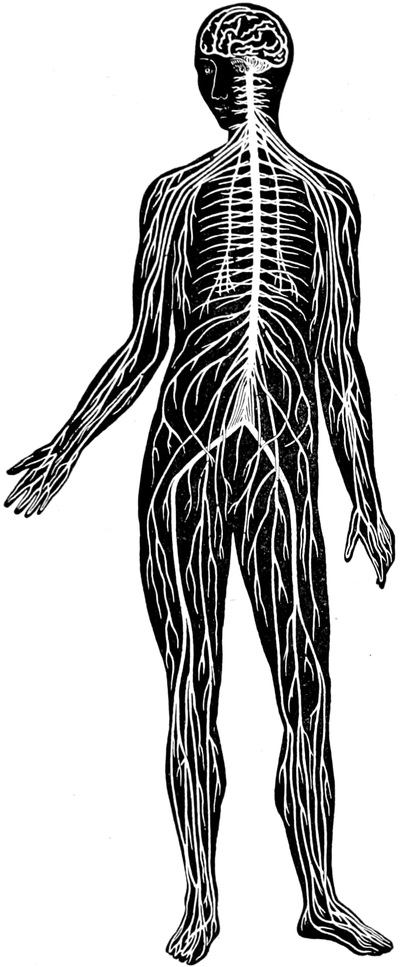
Fig. 314.
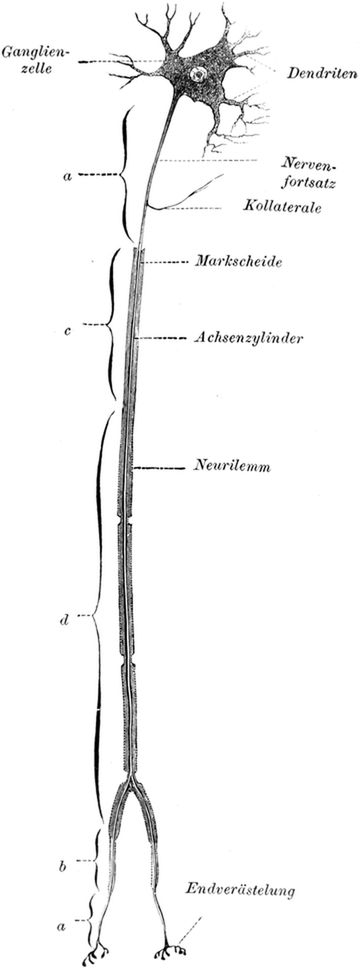
Fig. 315.
⇒ GRÖSSERES BILD
Fig. 314. Nervensystem des Menschen. Vom Gehirn und Rückenmark aus verlaufen die Nervenstränge, welche zentripetale und zentrifugale Leitungsbahnen enthalten, nach allen Körperteilen und verbinden sie so durch das Zentralnervensystem zu einem einheitlichen Ganzen. Nach RANKE.
Fig. 315. Schema eines Neuron. a Freier Achsenzylinder; b Achsenzylinder, nur vom Neurilemm umgeben; c Achsenzylinder, nur vom Nervenmark umgeben; d Achsenzylinder, vom Nervenmark und Neurilemm umgeben und durch RANVIERsche Schnürringe in Segmente geteilt. Aus STÖHR.
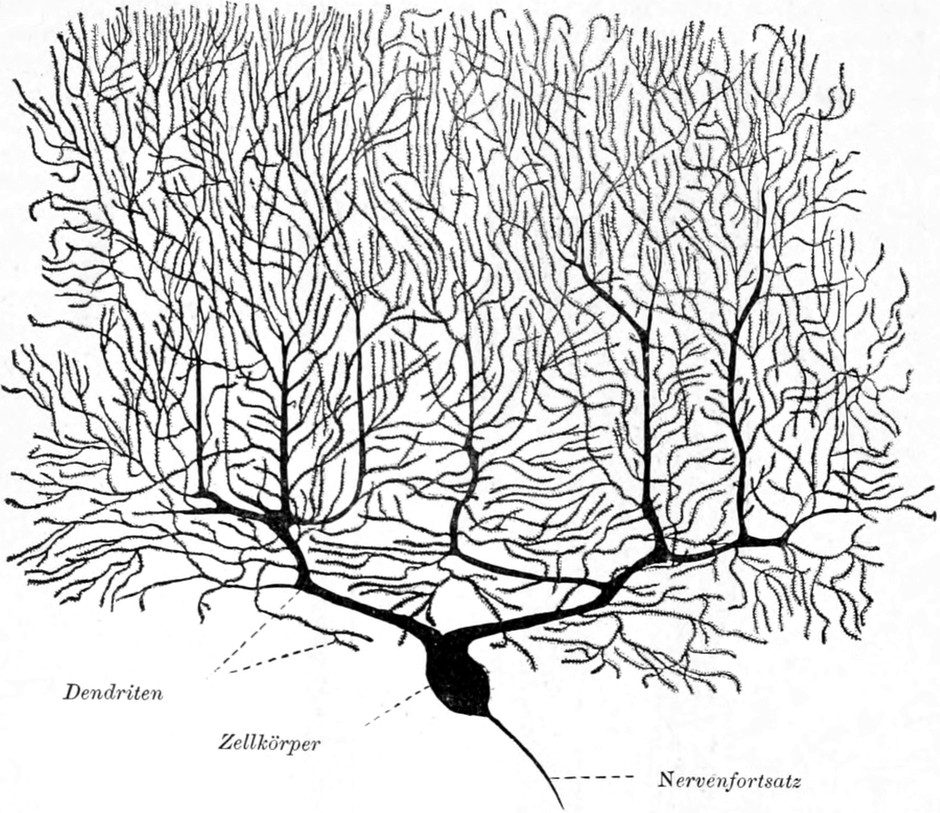
Fig. 316.
P
URKINJE
sche Ganglienzelle aus der grauen Rindenschicht des Gehirns mit reich entwickelten Dendriten
. Aus S
TÖHR
.
Die Art und Weise, wie anatomisch und funktionell die Elemente des Nervensystems untereinander verbunden sind, verdient noch unsere besondere Aufmerksamkeit, da die neueren Untersuchungen über den feineren Bau des Zentralnervensystems, welche durch die namentlich von GOLGI, HIS, RETZIUS, KÖLLIKER, RAMÓN Y CAJAL, WEIGERT, APÁTHY, NISSL, BETHE, HARRISON und anderen so außerordentlich hochentwickelte mikroskopische Technik ermöglicht worden sind, hier ganz eigentümliche, gesetzmäßige Verhältnisse aufgedeckt haben. Wir wissen jetzt, daß der elementare Baustein des Nervensystems das „Neuron“ ist, d. h. die Ganglienzelle mit allen ihren Fortsätzen. Von dem Zellkörper der Ganglienzelle gehen nämlich, je nach ihrer Funktion, mehr oder weniger zahlreiche Fortsätze aus, unter denen sich zwei verschiedene Arten voneinander unterscheiden. Die eine Art bildet ein mehr oder weniger reichverästeltes Gezweig und wird daher zweckmäßig als „Dendriten“ bezeichnet (Fig. 316). Es sind die sogenannten „Protoplasmafortsätze“, wie sie die älteren Histologen nannten. Die andere Art bildet den „Nervenfortsatz“ oder die „Nervenfortsätze“. Soviel wir bisher wissen, gibt es nach der Anzahl der letzteren nur zwei verschiedene Arten von Ganglienzellen, unipolare (früher multipolare wegen der zahlreichen Dendriten) mit nur einem Nervenfortsatz (Fig. 313), und bipolare mit zwei Nervenfortsätzen (Fig. 313). Diese Nervenfortsätze sind nichts anderes als die Anfänge der Nervenfasern, die bisweilen eine Länge von 1 m und mehr erreichen. Durch die wichtigen Untersuchungen der letzten Jahre, namentlich durch die Studien RAMÓN Y CAJAL,s und die Experimente HARRISONs über die Entwicklung des Neurons ist jetzt der alte Streit, ob die Nervenfaser eine Kette von selbständigen Zellen oder nur ein Fortsatz der Ganglienzelle sei, endgültig in dem Sinne entschieden worden, daß die Nervenfasern tatsächlich besonders differenzierte Ausläufer der Ganglienzellen sind. Diese Nervenfortsätze der Ganglienzellen nun sind es, welche die entferntesten Zellen des Tierkörpers mit den Ganglienzellen in leitende Verbindung setzen und die Impulse, die von den Ganglienzellen oder den Sinnesapparaten der Peripherie ausgehen, den betreffenden Gewebezellen oder im gegebenen Falle anderen Ganglienzellen übermitteln. In seinem Verlauf vom Ganglienzellkörper bis zu der Zelle, die er innerviert, zeigt der Nervenfortsatz an verschiedenen Punkten aber ein sehr verschiedenes Verhalten. Er sendet hier und dort kollaterale Aeste ab und umgibt sich bald nach seinem Ursprung mit einer aus Myelin bestehenden Hülle, dem „Nervenmark“, die durch die sogenannten RANVIERschen Schnürringe in einzelne Segmente geteilt ist und erst wieder kurz vor der Zelle verschwindet, die der Nerv versorgt. Das Nervenmark selbst, in dem der Nervenfortsatz als „Achsenzylinder“ verläuft, ist meist von einer membranartigen Scheide, dem „Neurilemm“, umgeben. Das Ende des Nerven schließlich zeigt je nach der Art der Zelle, die er innerviert, sehr mannigfache Differenzierungen. So bildet die Ganglienzelle mit ihren Dendriten und ihrem Nervenfortsatz den zellularen Baustein des ganzen Nervensystems, den WALDEYER in zweckmäßiger Weise mit dem kurzen Wort „Neuron“ bezeichnet hat (Fig. 315). Die Gesamtheit der zahllosen Neurone in ihrer Verbindung untereinander stellt das Nervensystem der Tiere vor, wenigstens in seinen wesentlichen Bestandteilen. Alle anderen Bestandteile des Nervensystems sind Stütz- oder Schutzeinrichtungen für die Neurone. Nach den neueren Untersuchungen von GOLGI, RAMÓN Y CAJAL, VAN GEHUCHTEN, KÖLLIKER, RETZIUS, HIS und anderen scheint die Verbindung der Neurone untereinander überall derartig zu sein, daß die Dendriten der Ganglienzelle die Reizimpulse aufnehmen, während der Nervenfortsatz die Impulse von einer Ganglienzelle her auf die Dendriten einer anderen überträgt (Fig. 313). Nur die bipolaren Ganglienzellen, die in den zu beiden Seiten des Rückenmarks gelegenen Spinalganglien enthalten sind, besitzen in dem peripherischen Nervenfortsatz eine Bahn, die von der Peripherie her in Form von äußeren Reizen Impulse aufnimmt und auf ihren Ganglienzellkörper in zentripetaler Richtung überträgt, von wo der Impuls dann durch den zentralen Nervenfortsatz und seine Kollateralen mit ihren Endverzweigungen zu anderen Neuronen fortgepflanzt wird. Man kann aber auch hier das allgemeine Gesetz, daß der Nervenfortsatz der Ganglienzelle die Erregung stets in zentrifugaler, die Dendriten der Ganglienzelle stets in zentripetaler Richtung in bezug auf den Ganglienzellkörper fortleiten, als gültig ansehen, wenn man, wie das vielfach geschehen ist, den peripherischen Fortsatz der Spinalganglienzelle nur als einen ungeheuer langen Dendriten betrachtet. Dann wäre die physiologische Richtung der Erregungsleitung im Neuron überall der gleichen Gesetzmäßigkeit unterworfen. Die Dendriten der Ganglienzellen zeigen in manchen Fällen, wie z. B. in den PURKINJEschen Ganglienzellen der grauen Hirnrinde, eine ganz erstaunlich reiche Entwicklung (Fig. 316, 317), und bieten damit der Zuleitung der Erregung zum Ganglienzellkörper eine Fülle von Wegen.
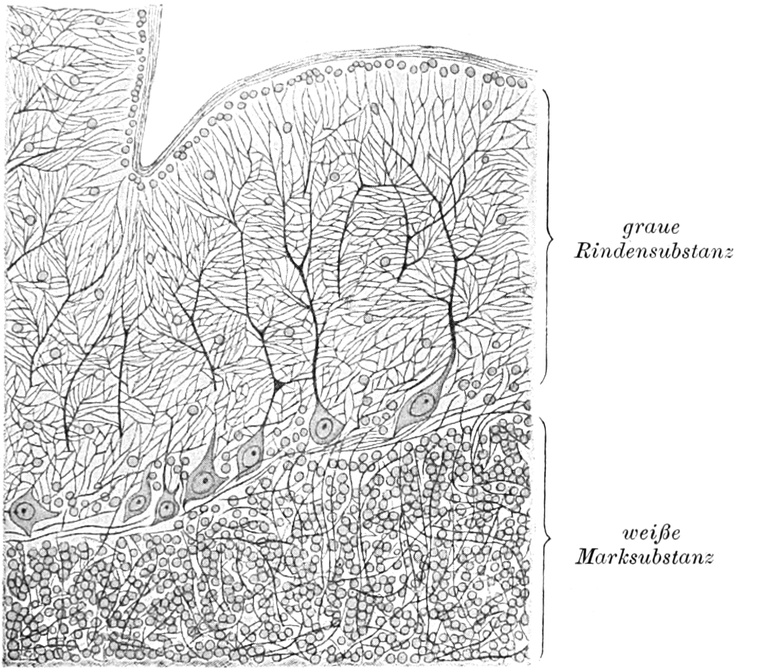
Fig. 317.
Schnitt durch die Kleinhirnrinde eines Kalbes
. Die großen verästelten Zellen sind P
URKINJE
sche Ganglienzellen. Nach S
CHIEFFERDECKER
.
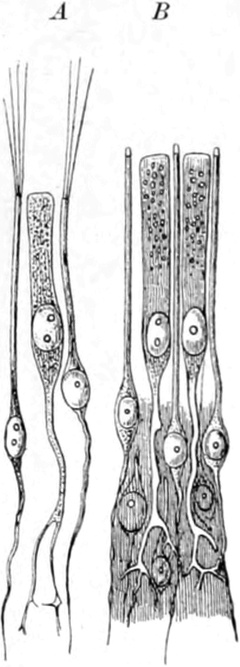
Fig. 318.
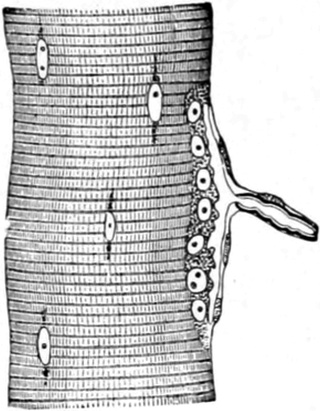
Fig. 319.
Fig. 318. Riechzellen. A vom Frosch, B vom Menschen. Die schmalen, spindelförmigen Zellen sind die Riechzellen, an die der Nerv tritt, die breiten, unten verzweigten sind epitheliale Stützzellen. Nach FREY.
Fig. 319. Motorische Nervenplatte im quergestreiften Muskel, von der Seite gesehen. Aus LANG.
In bezug auf die Frage nach der Verbindungsweise der Neurone untereinander sind die Ansichten der Histologen noch geteilt. Während die einen sich durch die GOLGIsche Imprägnationsmethode überzeugt zu haben glauben, daß die Nervenendausbreitungen der einen Neurone mit den Dendriten resp. dem Ganglienzellkörper der anderen Neurone nur durch innigen Kontakt zusammenhängen, finden die anderen, daß eine volle Kontinuität besteht, die durch den Uebergang feinster fibrillärer Differenzierungen durch ganze Ketten von Neuronen hindurch vermittelt wird. Wie dem auch sein mag, jedenfalls muß eine Einrichtung vorhanden sein, welche die Kontinuität der physiologischen Erregungsleitung gestattet[785].
Die Art schließlich, wie die Nervenfasern in die peripherischen Endzellen übergehen, die sie innervieren, oder aus denen sie entspringen, ist eine sehr mannigfaltige. Die von der Peripherie des Körpers her zentripetal leitenden (sensiblen) Nerven sowohl wie die zentrifugal nach der Peripherie hin leitenden (motorischen, sekretorischen, elektrischen etc.) Nerven sind je nach dem Organ, in dem sie endigen, verschieden. Unter den zentripetal leitenden, d. h. sensiblen Nerven, gibt es welche, die, ohne mit einer Sinneszelle in Verbindung zu stehen, frei in der Haut endigen. Die anderen entspringen direkt von einer Sinneszelle, die speziell für die Aufnahme des Reizes entwickelt ist, wie z. B. die Stäbchen- und Zapfenzellen des Auges, die Härchenzellen des Ohres, die Riechzellen der Nase (Fig. 318) etc. Unter den zentrifugal leitenden Nervenendigungen sind die der motorischen Nerven in den quergestreiften Muskeln am meisten charakteristisch. Hier wird der Uebergang der Nervenfaser in die Muskelsubstanz durch ein besonders differenziertes Nervenendorgan, die „motorische Nervenendplatte“, vermittelt, eine platten- oder geweihförmige Ausbreitung des Achsenzylinders im Sarkoplasma. Das letztere, das an dieser Stelle sehr körnig und durch viele Zellkerne charakterisiert ist, wird vom Sarkolemm der Muskelfaser bedeckt, welches hier direkt in das Neurilemm des Nerven übergeht (Fig. 319). Viel weniger kompliziert scheint die Endigungsweise der zentrifugalen Nerven in anderen Organen, wie glatten Muskelzellen, Drüsenzellen, Leuchtzellen etc., zu sein, aber diese Verhältnisse bedürfen zum Teil noch genauerer Untersuchung.
Durch die zentrale Verwaltung aller Funktionen des ganzen Organismus im Nervensystem allein ist es möglich, daß der Zellenstaat des Tierkörpers sich in so weitgehender Weise differenzieren konnte. Nur wenn im geeigneten Augenblick dieses oder jenes Organ in Tätigkeit tritt oder in Ruhe bleibt, nur wenn in zweckmäßiger Weise dieses oder jenes Organ auf eine Einwirkung an dieser oder jener Körperstelle reagiert, nur wenn in feinster Harmonie diese oder jene Zellen, Gewebe, Organe zusammenwirken, kann sich ein so überaus komplizierter Mechanismus entwickeln, wie wir ihn im Zellenstaat der Wirbeltiere und vor allem des Menschen vor uns haben.
** *
Hier mündet die allgemeine Physiologie in die spezielle Physiologie des tierischen und pflanzlichen Zellenstaates und seiner verschiedenen Entwicklungsformen ein. Es ist die Aufgabe der speziellen Physiologie, die besonderen Mechanismen, die sich aus dem Zusammenleben der Zellen im Zellenstaat ergeben, im einzelnen zu untersuchen und ihr Zusammenwirken zu erforschen. Das Gebiet der allgemeinen Physiologie ist hier zu Ende, denn die allgemeine Physiologie reicht nur so weit, als es sich um den Mechanismus derjenigen Lebensäußerungen handelt, die allen Organismen gemeinsam sind. Objekt der allgemeinen Physiologie bleiben daher die elementaren Lebensäußerungen der Zelle; denn die Zelle ist dasjenige Bauelement, das aller lebendigen Substanz zugrunde liegt. Es gibt keine lebendige Substanz, die nicht zu Zellen angeordnet wäre, und es gibt keine Funktion der lebendigen Substanz, die nicht im Lebensprozeß der Zelle ihren Ursprung hätte. Wenn daher die Physiologie in der Erklärung der Lebensäußerungen ihre Aufgabe sieht, so kann die allgemeine Physiologie nur eine Zellularphysiologie sein.