Drittes Kapitel. Von den elementaren Lebensäußerungen.
Reading edition
I. Der Stoffwechsel.
A. Die Aufnahme von Stoffen.
1. Die Nahrungsstoffe.
2. Der Modus der Nahrungsaufnahme von seiten der Zelle.
B. Die Umsetzung der aufgenommenen Stoffe.
1. Extrazellulare und intrazellulare Verdauung.
2. Die Fermente und ihre Wirkungsweise.
3. Assimilation und Dissimilation.
a) Assimilation.
b) Dissimilation.
C. Die Abgabe von Stoffen.
1. Der Modus der Stoffabgabe von seiten der Zelle.
2. Sekret- und Exkretstoffe.
a) Sekrete.
b) Exkrete.
II. Die Formbildung.
A. Die phylogenetische Entwicklungsreihe.
1. Die Vererbung.
2. Die Anpassung.
B. Die ontogenetische Entwicklungsreihe.
1. Wachstum und Fortpflanzung.
2. Die Formen der Zellteilung.
a) Die direkte Zellteilung.
b) Die indirekte Zellteilung.
3. Die Befruchtung.
4. Die Entwicklung des vielzelligen Organismus.
III. Der Energieumsatz.
A. Die allgemeinen Gesetze der Energetik.
1. Die Formen der Energie.
2. Das Gesetz von der Erhaltung der Energie: „Erster Hauptsatz“.
3. Der „zweite Hauptsatz“.
4. Das Wärmemaß der Energie.
B. Die Einfuhr von Energie in den Organismus.
1. Das Gesetz des Energieumsatzes bei chemischen Prozessen.
2. Die Zufuhr chemischer Energie.
3. Die Zufuhr von Licht.
4. Die Zufuhr von Wärme.
C. Die Energieproduktion des Organismus.
1. Die Produktion mechanischer Energie.
a) Passive Bewegungen.
b) Bewegungen durch Quellung der Zellwände.
c) Bewegungen durch Veränderungen des Zellturgors.
d) Bewegungen durch Veränderung des spezifischen Gewichts.
e) Bewegungen durch Sekretion.
f) Bewegungen durch Wachstum.
g) Bewegungen durch Kontraktion und Expansion.
Die amöboide Bewegung.
Die Muskelbewegung.
Die Flimmerbewegung.
2. Die Produktion von Licht.
3. Die Produktion von Wärme.
4. Die Produktion von Elektrizität.
Was wir Leben nennen, ist eine Reihe von Vorgängen, die untereinander überaus ungleichwertig sind. Die größte Zahl aller der Tätigkeiten, die beim Menschen das tägliche Leben ausmachen, ist teils komplexer Natur und setzt sich zusammen aus mehreren elementaren Vorgängen, teils stellt sie erst sekundäre Folgen elementarer Lebensvorgänge vor. Selbst die scheinbar einfachen und unmittelbaren unter ihnen, wie die Blutzirkulation, die Respiration etc., sind noch keine elementaren Lebensvorgänge. Elementar ist erst die Kontraktion des Herzens und der Atemmuskeln, welche sekundär die Zirkulation des Blutes und den Luftaustausch in den Lungen bewirkt; denn die Muskelkontraktion läßt sich nicht mehr auf die Tätigkeit anderer Elementarbausteine des Körpers zurückführen, sie ist unmittelbarer Ausdruck des Lebens derjenigen Zellen, an denen sie auftritt. Wollen wir aber die elementaren Lebensäußerungen kennen lernen, so müssen wir eben bis auf die Zellen zurückgehen, die Elementarorganismen, an denen sie auftreten.
Wenn wir so alle komplizierten Tätigkeiten und sekundären Aeußerungen bis zu den ihnen zugrunde liegenden Elementarprozessen zurück verfolgen, so finden wir, wie wir bereits sahen, drei große Gruppen von elementaren Lebensäußerungen, die in irgendeiner Form aller lebendigen Substanz, jeder Zelle eigentümlich sind, das sind die Tatsachen des Stoffwechsels, der Formbildung und des Energieumsatzes. Jede lebendige Substanz ohne Ausnahme, solange sie lebt, zeigt einen fortwährenden Wechsel der Stoffe, ferner Veränderungen ihrer Form und schließlich einen Umsatz von Energie, und diesen drei großen Gruppen der elementaren Lebensäußerungen lassen sich alle Lebensäußerungen, die es überhaupt gibt, einfügen, wenn man sie bis in die Elementarbausteine des Körpers, die Zellen derjenigen Organe verfolgt, an denen sie zu beobachten sind.
Suchen wir in diesem Kapitel uns einen Ueberblick über die Fülle der elementaren Lebensäußerungen zu verschaffen, indem wir zunächst nur die Tatsachen verzeichnen, um uns die Analyse der Lebensäußerungen bis in ihre chemischen und physikalischen Bedingungen für ein späteres Kapitel vorzubehalten.
I. Der Stoffwechsel.
A. Die Aufnahme von Stoffen.
Die Aufnahme von Nahrungsstoffen aus der Umgebung stellt die „Ernährung“ im weitesten Sinne vor. Wenn wir bei dem Begriff der Ernährung nur an die Nahrungsaufnahme des zusammengesetzten Organismus denken, so ist das lediglich ein äußerlicher Teil des ganzen Ernährungsprozesses, denn was wir beim Essen und Trinken in ein einziges Organ, den Magen, einführen, kommt jeder einzelnen von den vielen Millionen Zellen zu gute, die den Körper des Menschen zusammensetzen. Damit der Körper sich am Leben erhält, müssen alle Zellen bestimmte Nahrungsstoffe aufnehmen. Unsere Betrachtung wird sich daher auf zwei Punkte erstrecken müssen, einerseits auf die Beschaffenheit der Stoffe, die jede Zelle braucht, um ihr Leben zu unterhalten, und anderseits auf den Modus der Aufnahme dieser Nahrungsstoffe.
1. Die Nahrungsstoffe.
Alle lebendige Substanz muß, da sie fortwährend von selbst zerfällt, Stoffe in sich aufnehmen, welche die sämtlichen chemischen Elemente enthalten, aus denen die lebendige Substanz selbst sich wieder aufbaut.
Ist es so einerseits eine allgemeine Lebensäußerung jeder Zelle, überhaupt Nahrungsstoffe in sich aufzunehmen, so ist anderseits die Art dieser Nahrungsstoffe für jede bestimmte Zellenform verschieden. Trotz aller speziellen Verschiedenheiten der Stoffe aber, die jede einzelne Zellenform für ihr Leben braucht, lassen sich doch alle Organismen in einige wenige große Gruppen einreihen, innerhalb deren gewisse allgemeine Uebereinstimmungen in der Art der Ernährung herrschen.
Schon früh hat man einen fundamentalen Unterschied in der Ernährung der Pflanzen und Tiere gefunden. Alle grünen Pflanzen nehmen einfache anorganische Stoffe aus dem Erdboden und der Luft auf, um daraus ihre lebendige Substanz aufzubauen; alle Tiere dagegen ohne Ausnahme bedürfen hochkomplizierter organischer Verbindungen, um ihr Leben dauernd unterhalten zu können.
Diese Tatsache ist leicht festzustellen. Um sich zu überzeugen, daß Tiere ohne organische Nahrung nicht existieren können, braucht man nur entsprechende Fütterungsversuche anzustellen. Die Tiere gehen bei Fütterung mit rein anorganischen Stoffen, wie Wasser und Salzen, selbst wenn diese die chemischen Elemente der lebendigen Substanz sämtlich in richtigem Verhältnis enthalten, nach kürzerer oder längerer Zeit stets zugrunde. Dagegen kann man durch geeignete Versuche zeigen, daß Pflanzen nur auf Kosten von anorganischen Stoffen leben, indem man sie in sogenannten „Nährlösungen“ wachsen läßt, die in Gestalt von anorganischen Salzen die chemischen Elemente besitzen, welche zum Aufbau der lebendigen Substanz nötig sind. Eine solche Nährlösung, welche die Elemente N, H, O, S, P, Cl, Na, Mg, Ca, Fe, also mit Ausnahme des Kohlenstoffs alle organischen Elemente, in löslichen Verbindungen enthält, ist z. B. nach SACHS[98] folgendermaßen zusammengesetzt:
Wasser 1000 ccm
Salpetersaures Kali 1 g
Chlornatrium 0,5 g
Schwefelsaurer Kalk 0,5 g
Schwefelsaure Magnesia 0,5 g
Phosphorsaurer Kalk 0,5 g
Schwefelsaures Eisenoxydul 0,005 g
Taucht man die Wurzel eines Maiskorns, das man im Wasser zum Keimen gebracht hat, in einen Zylinder mit dieser Nährlösung, während die oberirdischen Teile in die Luft ragen (Fig. 53), so wächst die Pflanze am Licht ganz ausgezeichnet, entwickelt sich zu einer großen Maisstaude, treibt Blüten und bringt Samen, mit denen man das Experiment von vorn anfangen kann. Fehlt das Eisensalz in der Nährlösung, so wächst die Pflanze ebenfalls einige Zeit, bleibt aber farblos, und die mikroskopische Untersuchung der Blätter zeigt, daß den Zellen der Chlorophyllfarbstoff fehlt. Erst auf Zusatz von einer Spur Eisensulfat färben sich die Blätter grün.
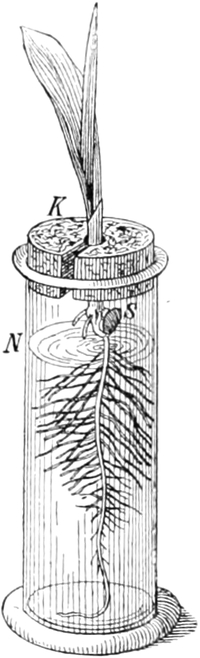
Fig. 53.
Maispflanze
in einem Zylinder mit Nährlösung wachsend.
N
Nährlösung,
S
Maiskorn,
K
Kork. Nach S
ACHS
.
In der Nährlösung ist, wie ein Blick auf die darin enthaltenen Stoffe zeigt, kein Kohlenstoff. Da die Pflanze aber unter allen Umständen Kohlenstoff zum Aufbau ihrer organischen Substanz braucht, so muß sie beim Wachsen den Kohlenstoff aus der Luft genommen haben. Deshalb mußte der Versuch auch so angestellt werden, daß die oberirdischen Teile in die Luft ragen. Schließt man durch Ueberstülpen einer Glocke die Luft vollständig ab, so geht die Pflanze in kurzer Zeit zugrunde. Der Kohlenstoff ist aber in der Luft nur in Form von Kohlensäure enthalten; die Pflanze muß ihn also aus dieser Verbindung beziehen, und in der Tat zeigt sich denn auch, daß, wenn man unter die Glocke eine bestimmte Menge Kohlensäure gelassen hat, nach kurzer Zeit alle Kohlensäure von der Pflanze verbraucht ist. Diese wichtige Tatsache, daß die Pflanze ihren Kohlenstoffbedarf nur aus der Kohlensäure der Luft bestreitet, ist bereits von INGENHOUSS und DE SAUSSURE entdeckt worden und bildet jetzt, nachdem sie zuerst eine Zeitlang angezweifelt worden war, eine der wichtigsten Grundtatsachen der ganzen Pflanzenphysiologie. Der Stickstoff der Pflanze dagegen kann, wie ein dem obigen analoger Versuch zeigt, nicht aus der Luft bezogen werden, obwohl er hier bekanntlich in Gasform in großer Menge vorhanden ist; er wird allein aus den stickstoffhaltigen Salzen des Wassers aufgenommen.
Aus diesen Versuchen geht also hervor, daß die Pflanzen ihre lebendige Substanz aufbauen aus einfachen anorganischen Verbindungen, und zwar aus der Kohlensäure der Luft, die von den Blättern aufgenommen wird, sowie aus dem Wasser mit seinen Salzen, das durch die Wurzeln in die Pflanzen gelangt. Demgegenüber vermag kein einziges Tier seine lebendige Substanz aus einfachen anorganischen Verbindungen synthetisch aufzubauen, selbst wenn alle Elementarbestandteile des tierischen Körpers darin enthalten sind; vielmehr brauchen alle Tiere ohne Ausnahme bereits fertiges organisches Material zu ihrem Leben.
Dieser Gegensatz zwischen Tier und Pflanze ist in der Tat von weittragender Bedeutung, denn er bringt die wichtige Tatsache zum Ausdruck, daß die Tierwelt nicht ohne die Pflanzenwelt existieren kann. Zwar gibt es eine große Zahl von Tieren, die Fleischfresser, die nur tierische Nahrungsstoffe, vor allem Fleisch brauchen, aber, verfolgt man weiter, woher wieder diese zur Nahrung dienenden Tiere ihr Material beziehen, so kommt man schließlich immer zu Pflanzenfressern, und die Pflanzenfresser können ohne Pflanzennahrung nicht leben. So ist auch der Fleischfresser in letzter Instanz auf die Existenz der Pflanzen angewiesen. Ohne Pflanzen würde die Tierwelt zugrunde gehen, denn nur die Pflanzen vermögen aus anorganischen Stoffen Kohlehydrate, Fette und Eiweiß herzustellen, deren die Tiere zu ihrer Existenz notwendig bedürfen. Man kann also der alten Naturphilosophie aus dem Anfange des vorigen Jahrhunderts nicht ganz Unrecht geben, wenn sie in ihrer gesuchten Ausdrucksweise die ganze Tierwelt als Parasiten der Pflanzen bezeichnete.
Man hat lange Zeit geglaubt, daß der eben besprochene Unterschied in der Ernährung der Tiere und Pflanzen ein durchgreifender sei, so daß man alle lebendigen Zellen nach ihrem Stoffwechsel einfach in tierische und pflanzliche Zellen trennen könne. Allein es hat sich herausgestellt, daß dieser Unterschied doch nur innerhalb bestimmter Grenzen besteht, nämlich nur soweit es sich um tierische Zellen einerseits und um grüne, d. h. chlorophyllhaltige Pflanzenzellen anderseits handelt, denn diejenigen Bestandteile der Pflanzenzelle, in denen die Kohlensäure aufgenommen und verarbeitet wird, sind ausschließlich die grünen Chlorophyllkörper. Es gibt aber Pflanzen ohne Chlorophyll oder analoge Farbstoffe, wie z. B. die Pilze, die in ihrem Stoffwechsel gewissermaßen einen Uebergang zwischen den Tieren und den grünen Pflanzen bilden.
Die Pilze haben nämlich nicht die Fähigkeit der chlorophyllführenden Pflanzen, ihren Kohlenstoff aus der Kohlensäure der atmosphärischen Luft zu beziehen; sie brauchen vielmehr, um ihren Kohlenstoffbedarf zu decken, ebenso wie die Tiere organische Stoffe, wie Eiweiß, Kohlehydrate etc., denen sie den Kohlenstoff entnehmen. Dagegen verhalten sich die Pilze wie Pflanzen, insofern sie ihren Bedarf an Stickstoff auch aus anorganischen Salzen dem Boden entnehmen können, während die Tiere zur Deckung ihres Stickstoffbedarfs allein auf die Eiweißkörper und deren Derivate angewiesen sind. Diese Tatsachen ergeben sich aus Versuchen mit Nährstofflösungen, in denen Pilze nicht wachsen, wenn ihnen kein organisches Material zur Verfügung steht, dagegen vortrefflich gedeihen, wenn ihnen beispielsweise neben einfachen stickstoffhaltigen Salzen noch Zucker geboten wird. Somit haben wir in den Pilzen eine Gruppe von Organismen, die in ihrem Stoffwechsel halb tierische, halb pflanzliche Charaktere vereinigen. Aber auch damit sind noch nicht alle tatsächlich vorkommenden Verhältnisse erschöpft. In der Welt der Mikroorganismen kommen zahlreiche Formen vor, die ganz ähnliche Uebergangsglieder vorstellen, und je mehr wir die höchst eigenartigen Lebensverhältnisse dieser mikroskopischen Wesen, vor allem der Bakterien, erforschen, um so mehr scheint es, als ob in der Gruppe dieser kleinsten Organismen die Verhältnisse des Stoffwechsels überhaupt noch nicht so einseitig differenziert sind wie bei den höher organisierten Tieren und Pflanzen. So hat zuerst der ausgezeichnete Bakterienforscher WINOGRADSKY[99] Bakterienformen entdeckt, die in der Erde leben und ganz aus anorganischem Material, nämlich hauptsächlich aus kohlensaurem Ammon und einigen Mineralstoffen, ihre lebendige Substanz aufbauen. Diese merkwürdigen Stickstoffbakterien (Nitromonas) verhalten sich also genau wie die grünen Pflanzen, obwohl sie kein Chlorophyll besitzen, während hingegen andere Bakterienformen ohne organische Nahrung nicht bestehen können.
Werfen wir noch einen Blick auf die speziellere Ernährung der Tiere, so herrscht auch hier in bezug auf die organischen Nahrungsstoffe eine ziemlich bedeutende Verschiedenheit zwischen den einzelnen Tierformen. Nur in einem Punkte herrscht allgemeine Uebereinstimmung: Alle Tiere ohne Ausnahme brauchen Eiweiß oder wenigstens die das Eiweiß aufbauenden Aminosäuren in ihrer Nahrung. Schon seit langer Zeit ist bekannt, daß unter allen Nahrungsstoffen nur das Eiweiß als ausschließliche Nahrung, wie z. B. bei den Fleischfressern, hinreicht, um den Bedarf aller zum Aufbau des Körpers erforderlichen Elementarstoffe zu decken, und PFLÜGER[100] hat durch eingehende Versuche gezeigt, daß sogar Hunde selbst dann noch dauernd von reiner Eiweißnahrung leben können, wenn sie täglich harte Arbeit verrichten müssen. Die Hunde verlieren bei diesen Versuchen schon nach kurzer Zeit fast alles Körperfett, bleiben aber im höchsten Maße leistungsfähig, kräftig und gesund. Dagegen ist es unmöglich, Tiere allein mit Kohlehydraten oder mit Fetten oder auch mit beiden zusammen am Leben zu erhalten. Die Tiere zehren dann trotz reichlichster Fett- oder Kohlehydratnahrung von ihrem eigenen Körpereiweiß, wie das die fortdauernde Stickstoffausscheidung im Harne zeigt, und gehen schließlich unfehlbar zugrunde. Diese Tatsache ist ohne weiteres verständlich, denn da die lebendige Substanz fortwährend von selbst in bestimmtem Maße zerfällt, muß sie immer wieder neu aufgebaut werden, wenn das Tier leben soll. Das kann nicht geschehen, wenn dem Tier kein Stickstoff geliefert wird, der ja den Kohlehydraten und Fetten fehlt. Aus anorganischen Verbindungen können die Tiere, wie wir sahen, keinen Stickstoff aufnehmen. Es bleiben also für die Deckung des Stickstoffbedarfs beim Tier nur organische Stickstoffverbindungen übrig, und unter diesen sind es die Eiweißkörper, die das Tier ganz allgemein mit Stickstoff versorgen. Da indessen die Eiweißkörper der Nahrung bei der Verdauung erst in einfachere Bestandteile gespalten werden, ehe sie zum Aufbau der lebendigen Substanz zur Verwendung kommen, so ist in neuerer Zeit die Frage entstanden, ob nicht auch mit einfacheren stickstoffhaltigen Spaltungsprodukten des Eiweiß der Stickstoffbedarf des Tieres gedeckt werden kann. In der Tat ist das der Fall. Von den Peptonen wußten wir schon lange, daß sie die nativen Eiweißkörper in der Nahrung ersetzen können. In neuester Zeit hat aber OTTO LOEWI[101] durch höchst interessante Versuche gezeigt, daß auch stickstoffhaltige Spaltungsprodukte, die nicht mehr Eiweißnatur haben, wie die Aminosäuren, im stande sind, den Stickstoffbedarf des Tieres zu decken, und zahlreiche Forscher wie ABDERHALDEN und RONA, HENDERSON und DEAN, LÜTHJE u. a. haben die von LOEWI entdeckte Tatsache bestätigt. Wir können also demnach die wichtige Tatsache feststellen, daß von allen organischen Substanzen allein die Eiweißkörper und ihre nächsten stickstoffhaltigen Spaltungsprodukte bis zu den Aminosäuren herab für die Ernährung der Tiere unentbehrlich, aber auch in gewissen Fällen allein ausreichend sind, um das Leben der Tiere dauernd zu erhalten.
Neben der Aufnahme der eigentlichen Nahrung im engeren Sinne ist die Aufnahme von Sauerstoff fast allen Organismen gemeinsam, mit Ausnahme einer kleinen, nur den niederen Organismengruppen angehörigen Zahl von Organismen, die in eigentümlicher Weise an das Leben ohne Sauerstoff angepaßt sind und daher den Namen der „anaeroben Organismen“ erhalten haben. Der Vorgang der Sauerstoffaufnahme und des Verbrauchs von Sauerstoff zu Oxydationsprozessen in der lebendigen Substanz wird als ein besonderer und wichtiger Teilprozeß des Stoffwechsels seit altersher mit dem besonderen Namen der „Atmung“ bezeichnet. Freilich beziehen nicht alle sauerstoffatmenden Organismen den Sauerstoff in gleicher Weise und aus gleicher Quelle. Die Landorganismen nehmen ihn in Gasform aus der Luft, die Wasserorganismen verbrauchen den im Wasser gelösten Sauerstoff, die Gewebezellen entnehmen ihn dem Blute resp. der Lymphe.
Schließlich nehmen alle Organismen ohne Ausnahme Wasser in sich auf und teils mit dem Wasser, teils mit der festen Nahrung gewisse Salze, die ebenfalls unentbehrlich sind für die Erhaltung des Lebens, wenn auch in bezug auf die Art der erforderlichen Salze unter den einzelnen Organismen weitgehende Verschiedenheiten herrschen. Unentbehrlich aber scheinen allen Organismen zu sein die phosphor-, schwefel-, kohlenstoff- und chlorhaltigen Salze des Natriums, Kaliums, Magnesiums, Kalks und Eisens.
Das ist ein kurzer Ueberblick über die Nahrungsstoffe der Organismen. Betrachten wir jetzt, wie die einzelne Zelle diese Nahrung erlangt.
2. Der Modus der Nahrungsaufnahme von seiten der Zelle.
Die Nahrungsstoffe sind teils in gasförmigem, teils in flüssigem, d. h. gelöstem, teils in geformtem Zustande, aber bei weitem nicht alle lebendigen Zellen sind in der Lage, geformte Nahrung aufzunehmen. Die größte Mehrzahl aller Zellen, fast alle tierischen und pflanzlichen Gewebezellen, und viele einzelligen Organismen nehmen nur gelöste Nahrung auf, sei es, daß ihre Nahrung von vornherein gleich ausschließlich in gelösten Stoffen besteht, sei es, daß sie die geformte Nahrung erst durch Einwirkung bestimmter Sekrete außerhalb ihres Zellkörpers in den gelösten Zustand überführen. Nur eine verhältnismäßig kleine Zahl von Zellformen ist auf die Aufnahme geformter Nahrung eingerichtet.
Bei der Aufnahme der gasförmigen und gelösten Nahrungsstoffe, die wir als „Resorption“ bezeichnen, handelt es sich im wesentlichen um den Durchtritt dieser Stoffe durch die Oberflächen des Zellprotoplasmas. Dieser Durchtritt wird bestimmt durch die speziellen Eigenschaften des Protoplasmas, das die Eigenschaften einer semipermeablen Membran besitzt[102]. Selbstverständlich kann das Protoplasma überall, wo es an seiner Oberfläche mit Nahrungsstoffen in Berührung steht, stets auch direkt mit diesen in chemische Beziehung treten.
Eine Zufuhr von gasförmiger und gelöster Nahrung steht aber jeder Zelle zur Verfügung.
Bei den Pflanzen tritt die Kohlensäure und der Sauerstoff der Luft in direkte Berührung mit den Zellen der Blätter. Ebenso ist es in den Lungen der Wirbeltiere. Die feinsten Aeste des Bronchialbaumes endigen in kleinen blinden Säckchen, den sogenannten Lungenalveolen, die von einer äußerst dünnen Lage von Epithelzellen gebildet und von einem dichten, ebenfalls überaus dünnwandigen Netz von Blutgefäßkapillaren umsponnen sind. Durch die dünnen Wände kann der Sauerstoff der in die Lungen eingeatmeten Luft leicht hindurchtreten, um dann von den roten Blutkörperchen gierig aufgenommen und im ganzen Körper umhergetragen zu werden.
Auch die gelösten Stoffe bespülen stets die Oberfläche der Zellen. In den Pflanzen steigen sie mit dem Wasser in feinen röhrenförmigen Kanälen in die Höhe und werden so den Zellen direkt zugeführt. Im zusammengesetzten Tierkörper stehen die Zellen teils unmittelbar, wie die Zellen des Darmepithels, mit den gelösten Nahrungsstoffen des Darmtraktus in Berührung, teils werden sie, wie die sämtlichen Gewebezellen, vom Blut- resp. Lymphstrom umspült, der ihnen die gelöste Nahrung bereits in bestimmt verarbeiteter Form zuträgt. Auch bei solchen wirbellosen Tieren, die kein eigentliches Blutzirkulationssystem besitzen, stehen die Zellen entweder unmittelbar mit dem umgebenden Wasser in Berührung oder werden von Säften versorgt, die in feinen Interzellularlücken die Zellen umspülen. Am einfachsten schließlich liegen die Verhältnisse bei einzelligen Organismen, die sich, wie die Algen, Bakterien und andere, stetig in einer Nährlösung, sei es im Wasser mit seinen Salzen, sei es in organischen Flüssigkeiten, befinden.
Eine Aufnahme geformter Nahrung finden wir nur bei wenigen Zellformen. Von den einzelligen Organismen nehmen alle Rhizopoden, die meisten Wimperinfusorien und einige Geißelinfusorien geformte Nahrung auf. Im zusammengesetzten Zellenstaat besitzen die Leukocyten oder weißen Blutkörperchen, die deshalb von METSCHNIKOFF auch als „Phagocyten“ (Freßzellen) bezeichnet worden sind, ferner die bei niederen Tieren die Rolle von Leukocyten spielenden amöboiden Wanderzellen, dann amöboide Eizellen, wie sie bei Schwämmen vorkommen, und schließlich die Darmepithelzellen mancher Tiere diese Fähigkeit. Unter allen diesen Zellformen kann man zwei Typen nach der Art der Aufnahme geformter Nahrung unterscheiden: Die einen können an jeder beliebigen Stelle ihrer Oberfläche die Nahrungskörper in ihre lebendige Substanz aufnehmen; das sind alle amöboiden Zellen, zu denen die Rhizopoden, Leukocyten und manche Darmepithelzellen gehören; die anderen haben eine besondere, dauernd bestehende Zellmundöffnung, das sind die Wimper- und Geißelinfusorien, die bereits eine bestimmt fixierte Körperform mit festerer Hautschicht besitzen. Alle Zellen aber, die überhaupt geformte Nahrung aufnehmen, können es nur vermöge aktiver Körperbewegungen.
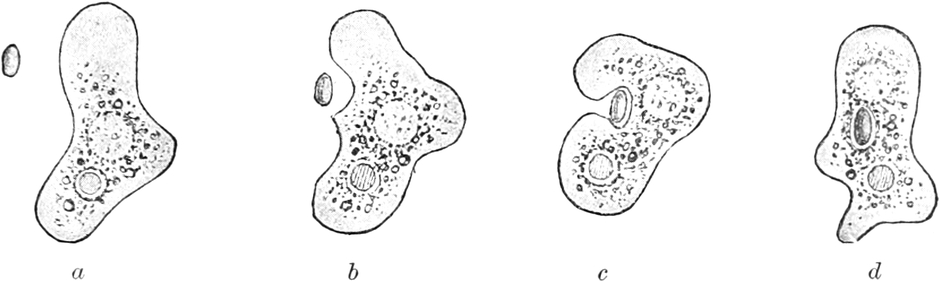
Fig. 54.
Amöbe, eine Algenzelle fressend
. Vier aufeinanderfolgende Stadien der Nahrungsaufnahme.
Als Beispiel für den ersten Typus kann uns die Nahrungsaufnahme der Amöben dienen. Der Vorgang, den man nur verhältnismäßig selten vollständig beobachtet, verläuft etwa folgendermaßen. Eine Amöbe, die wir im Wassertropfen unter dem Mikroskop verfolgen, kriecht, indem sie bald hierhin, bald dorthin die lebendige Substanz ihres formlosen Protoplasmakörpers in breite, lappenförmige Ausläufer vorfließen läßt, auf der Glasplatte umher (Fig. 54). Plötzlich wendet sie sich einer kleinen, in der Nähe liegenden Algenzelle zu und kriecht heran, bis sie die Algenzelle berührt. Alsbald beginnt ihr Protoplasma in Form der gewöhnlichen lappigen „Pseudopodien“ von der Seite her um die Algenzelle herumzufließen, aber durch das herandrängende Protoplasma wird die Algenzelle fortgeschoben, und die Amöbe muß von neuem einen Versuch machen, mit ihren Pseudopodien die Algenzelle zu umfließen. Nach mehreren fruchtlosen Versuchen gelingt es der Amöbe, die Algenzelle in eine solche Lage zu bringen und durch ein feines klebriges Sekret so festzuhalten, daß ihre Pseudopodien die Alge vollständig umgreifen können. Indem jetzt das Protoplasma immer weiter und weiter um die Algenzelle herumfließt, schließt es sie allmählich von allen Seiten her ein, und die Alge befindet sich von einer dünnen Wasserhülle, der sogenannten „Nahrungsvakuole“, umgeben im Innern der Amöbe, die dann unbehindert weiterkriecht. Die Amöbe nimmt also die geformte Nahrung in sich auf, indem ihr Protoplasma den Nahrungskörper einfach umfließt. Allein nicht immer verläuft der Akt so glatt. Die Schwierigkeiten, welche entstehen, bis der Nahrungskörper, der fortwährend dem Druck des heranfließenden Protoplasmas nachgibt, so fixiert ist, daß ihn das Protoplasma von allen Seiten umschließen kann, sind häufig so groß, daß die Amöbe sich mit ihren auch nach anderen Seiten fortdauernd vorfließenden Pseudopodien nicht selten wieder von ihrem Opfer entfernt und von neuem erst wieder herankriechen muß, um sich desselben zu bemächtigen, wenn sie sich nicht zu weit aus der Einwirkungssphäre des Nahrungskörpers entfernt hat.
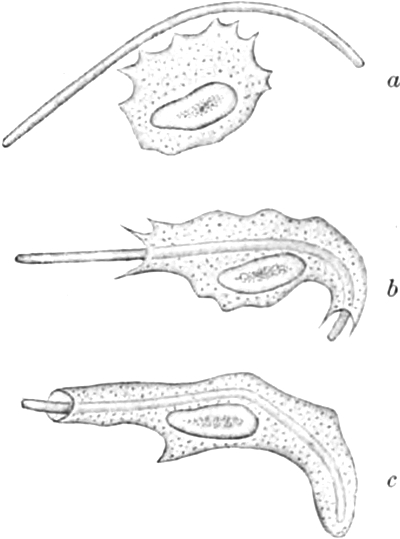
Fig. 55.
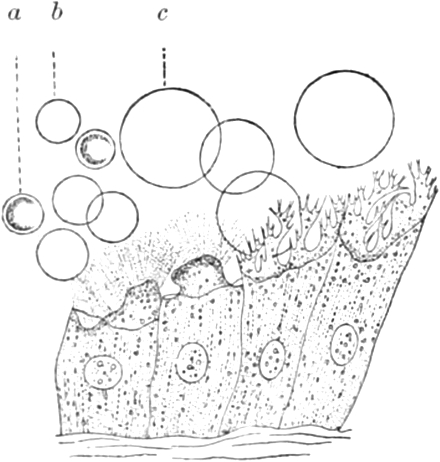
Fig. 56.
Fig. 55. Leukocyt vom Frosch, einen Bakterienfaden fressend. Drei auf einanderfolgende Stadien der Nahrungsaufnahme. Nach METSCHNIKOFF.
Fig. 56. Darmepithelzellen des Leberegels mit pseudopodienartigen Protoplasmafortsätzen zur Aufnahme der Blutkörperchen a, b und Chylustropfen c. Nach SOMMER.
Genau wie bei der Amöbe findet auch die Nahrungsaufnahme bei den anderen Rhizopoden statt, mögen sie nun dicke lappige, feine fadenförmige oder baumartig verästelte Pseudopodien haben. Sind die Nahrungskörper bewegliche Organismen, wie z. B. Infusorien, so bewirken sie durch den Reiz des Anschwimmens an den Rhizopodenkörper meist die Ausscheidung eines klebrigen Sekretes, die durch den Reiz der Fluchtversuche noch vermehrt wird, so daß die Nahrungsorganismen immer fester kleben und in das Protoplasma hineingezogen werden können. Auch die amöboiden Wanderzellen und Leukocyten nehmen geformte Stoffe, die sich im Blute oder in den Gewebelücken zwischen den Zellen befinden, ebenso auf wie die Amöben und besitzen, wie METSCHNIKOFF[103] durch seine bewunderungswürdigen Arbeiten gezeigt hat, eine große Bedeutung für den Schutz des Körpers vor bestimmten Infektionskrankheiten, indem sie gewisse pathogene Bakterien, die in eine Wunde hineingekommen sind, auffressen (Fig. 55), ihre Vermehrung verhüten und den Körper vor weiterer Erkrankung schützen. Endlich schließt sich auch die Aufnahme mikroskopischer Fetttröpfchen von seiten der Darmepithelzellen allerdings nur bei einzelnen wirbellosen Tieren demselben Modus der Nahrungsaufnahme an. Bei diesen Tieren, z. B. bei manchen Würmern, sind die Darmepithelzellen wirklich amöboide Zellen und umfließen mit ihren Pseudopodien die Fettkügelchen des Speisebreies (Fig. 56). Bei den höheren Tieren, bei den Säugetieren und dem Menschen dagegen haben die Darmepithelzellen nicht mehr diese Fähigkeit.
Die seinerzeit von THANHOFFER[104] beschriebene und fast allgemein als zutreffend angenommene Beobachtung, nach der auch bei Wirbeltieren die Darmepithelzellen Fetttröpfchen als solche in ihren Zellkörper aktiv hineinziehen sollten, hat sich nicht bestätigt. Die Fettaufnahme im Darm des Wirbeltieres findet seitens der Darmepithelzellen nur nach Spaltung des Fettes in seine Konstituenten Glyzerin und Fettsäuren und nach Verseifung der letzteren statt, unterliegt also dem Modus der Aufnahme gelöster Stoffe.
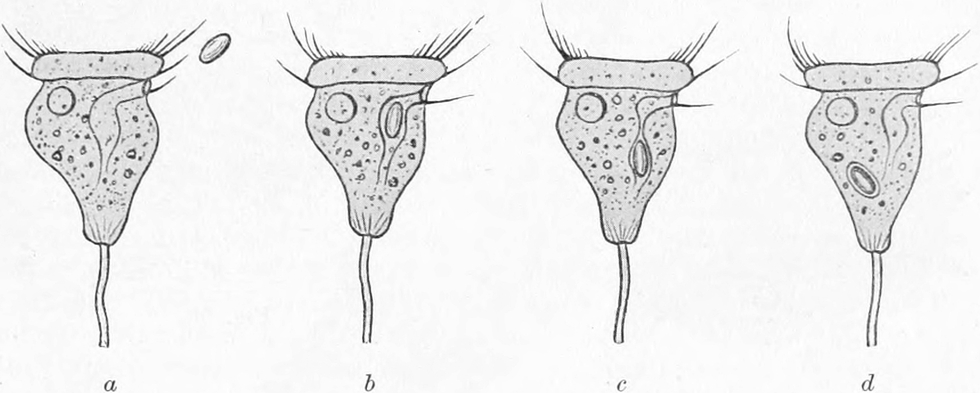
Fig. 57.
Vorticella
bei der Nahrungsaufnahme in vier aufeinanderfolgenden Stadien. Eine Algenzelle wird in den Zellmund hineingestrudelt und durch den Pharynx ins Endoplasma aufgenommen.
Ganz anders sind die Verhältnisse beim zweiten Typus der Nahrungsaufnahme, wo die Zelle eine festere, formbeständige Oberflächenschicht besitzt und nur eine kleine Oeffnung, den Zellmund, der direkt ins dünnflüssige Endoplasma führt. Hier vermittelt ausschließlich die Bewegung der Wimpern und Geißeln der Zelle die Aufnahme der geformten Stoffe. Als Beispiel kann uns Vorticella dienen, ein Wimperinfusorium, dessen glockenförmiger Zellkörper auf einem kontraktilen Stiel festsitzt und an seinem breiten Ende mit einem spiralförmigen Kranz von Wimpern besetzt ist (Fig. 57). Am Grunde dieses spiralförmigen Wimpertrichters befindet sich der Zellmund, der sich noch ein Stück weit als Zellpharynx in das Protoplasma fortsetzt, aber dann allmählich im dünnflüssigen Endoplasma verschwindet. Die Wimpern des „Peristomkranzes“ schlagen nun fortwährend in rhythmischem Tempo und erzeugen auf diese Weise im Wasser einen Strudel, der so gerichtet ist, daß er kleine Teilchen, wie Detritus- und Schlammpartikelchen, Bakterien, Algen etc., die im Wasser suspendiert sind, in den Zellmund hineinstrudelt, von wo sie, mit einer Wasserhülle umgeben, durch Kontraktionen des Körpers in den Zellpharynx und weiter bis in das Endoplasma hinein geschoben werden (Fig. 57). Der Vorgang läßt sich sehr leicht beobachten, wenn man, wie das schon EHRENBERG[105] getan hat, Karmin- oder Indigokörnchen in das Wasser mischt. Alsdann sieht man, wie die Vorticellen die roten oder blauen Körnchen in sich hineinstrudeln und in ihrem Protoplasma zu Klumpen zusammenballen, die von einer Wasserhülle, der Nahrungsvakuole, umgeben sind.
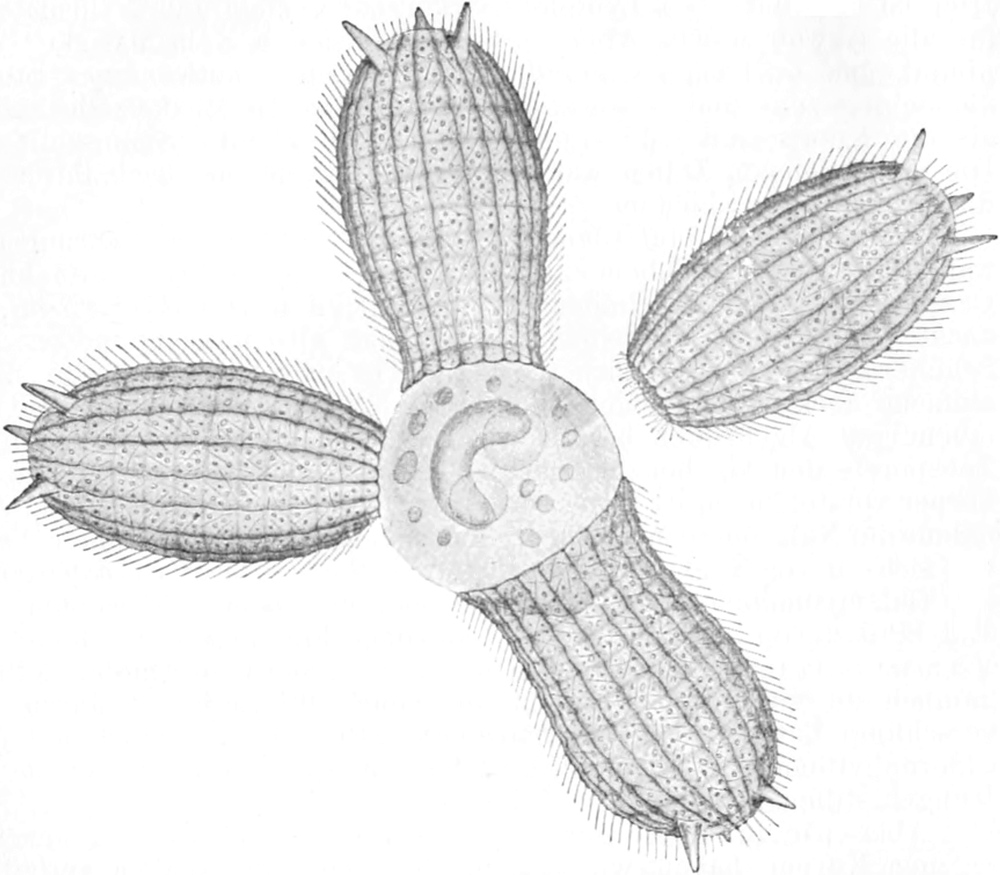
Fig. 58.
Vier Individuen von Coleps hirtus
, einen Nahrungsballen umschwärmend und aufnehmend.
Ganz ähnlich wie bei Vorticella ist auch die Nahrungsaufnahme bei den meisten anderen Infusorien. Die freischwimmenden Formen suchen häufig festliegende Nahrungsmassen selbst auf und strudeln sie in sich hinein. Ja, es kommt vor, daß manche Infusorien wie z. B. Coleps, ein kleines eiförmiges Wimperinfusorium mit zierlichem Gitterpanzer, große Nahrungsballen, die breiter sind als ihre Mundöffnung, aufnehmen, indem sie sich mit der Mundöffnung durch die Kraft ihres Wimperschlages auf den Nahrungsballen hinaufpressen, bis sich die Mundöffnung, wie bei einer Schlange, immer mehr und mehr erweitert. So „lutschen“ sie förmlich den Nahrungsballen in sich hinein (Fig. 58).
Die Aufnahme geformter Nahrung von seiten der Zelle ist also in jedem Falle durch aktive Bewegungen des Zellprotoplasmas oder seiner Bewegungsorganoide bedingt.
Bei der Aufnahme von Stoffen seitens der lebendigen Zelle verdient eine Tatsache noch besonderes Interesse, das ist die Tatsache der Nahrungsauswahl. Von verschiedenartigen, in demselben Medium lebenden Zellen nimmt jede Zelle andere Stoffe in sich auf, Stoffe, die sie für den Aufbau gerade ihrer charakteristischen Zellsubstanz nötig hat. Das ist schon deutlich bei den Gewebezellen hochorganisierter Tiere, z. B. des menschlichen Körpers zu sehen. Hier ist die Blut- resp. Lymphflüssigkeit das gemeinsame Nährmaterial für alle Gewebezellen. Aber dieser gemeinsamen Nährflüssigkeit entnimmt jede Zellform die gerade für ihr Leben notwendigen Stoffe; die Schleimzelle andere als die Ganglienzelle, die Muskelzelle andere als die Knorpelzelle, die Leberzelle andere als die Sinneszelle usf. Die verschiedenen Zellen wählen gewissermaßen jede nach ihrem Bedürfnis ganz verschiedene Stoffe für sich aus.
Vielleicht noch auffallender ist diese Tatsache der Nahrungsauswahl bei gewissen freilebenden Zellen, die geformte Nahrung aufnehmen. CIENKOWSKI[106], der das Leben der niedrigsten Rhizopodenformen, der nackten „Monaden“, eingehend studiert hat, gibt uns eine interessante Schilderung davon, wie sich Colpodella und Vampyrella, zwei einfache nackte Rhizopodenzellen, ihre Nahrung verschaffen, die aus lebendigen Algenzellen besteht. CIENKOWSKI berichtet: „Obwohl die Zoosporen- und Amöbenzustände der Monaden nur nackte Protoplasmakörper vorstellen, so ist trotzdem ihr Verhalten bei Aufsuchen und Aufnahme der Nahrung so merkwürdig, daß man Handlungen bewußter Wesen vor sich zu sehen glaubt. So sticht z. B. die Colpodella pugnax die Chlamydomonas an, saugt das heraustretende Chlorophyll aus und läuft davon. Einen zweiten seltsamen Fall dieser Art bietet die Vampyrella Spirogyrae. Die zu ihr gehörende Amöbe legt sich nämlich an gesunde Spirogyren an, bohrt die Zellwand durch und verschlingt den langsam heraustretenden Primordialschlauch mit dem Chlorophyllbande zusammen. Und nur an Spirogyren scheint sie den Hunger stillen zu können.“ (Fig. 59.)
Aber wir brauchen gar nicht so weit zu suchen. In unserem eigenen Körper haben wir Zellen, die sich ganz ähnlich verhalten. Die Leukocyten fressen, wie METSCHNIKOFF[107] durch seine langjährigen Untersuchungen gezeigt hat, gewisse Bakterienformen, die in den Körper gelangt sind, auf und verdauen sie, während sie andere Bakterien verschmähen, ja sogar geradezu fliehen.
Ein anderer, ebenfalls sehr interessanter Fall von Stoffauswahl schließlich, der zwar nicht in der Aufnahme von Nahrung, wohl aber auch von solchen Stoffen besteht, die im Leben der betreffenden Organismen eine Rolle spielen, ist gleichfalls vielfach, wenn auch mit Unrecht, auf ein bewußtes Auswahlvermögen der Zelle bezogen worden. Es ist die Aufnahme von Schalen- und Gehäusebaumaterial von seiten gewisser schalentragender Rhizopoden. Die Difflugien, einzellige Rhizopoden des Süßwassers, deren nackter Protoplasmaleib in einem überaus zierlichen Gehäuse von Urnen- oder Flaschenform steckt, nehmen das Baumaterial für ihre niedlichen Wohnungen aus dem Schlamm der Tümpel und Seen, an deren Grunde sie leben, mit ihren fingerförmigen „Pseudopodien“ selbst in sich auf[108]. Das Baumaterial ihrer Gehäuse ist sehr verschieden, aber man findet Formen, deren Gehäuse nur aus einem ganz bestimmten Material zusammengekittet ist (Fig. 60). So findet man Difflugienformen, die ihr Gehäuse nur aus den Panzern der Kieselalgen oder „Diatomeen“ aufgebaut haben, während andere nur Sandkörnchen von bestimmter Größe und wieder andere Schlammpartikelchen zu ihrer Maurerarbeit benutzt haben. Man hat daraus den Schluß ziehen wollen, daß die Difflugien das Baumaterial unter den ihnen zu Gebote stehenden Stoffen nach bestimmten Gesichtspunkten mit Ueberlegung auswählen. Allein wir werden später sehen, daß von einer so grob anthropomorphen Auffassung des Vorgangs gar keine Rede sein kann.
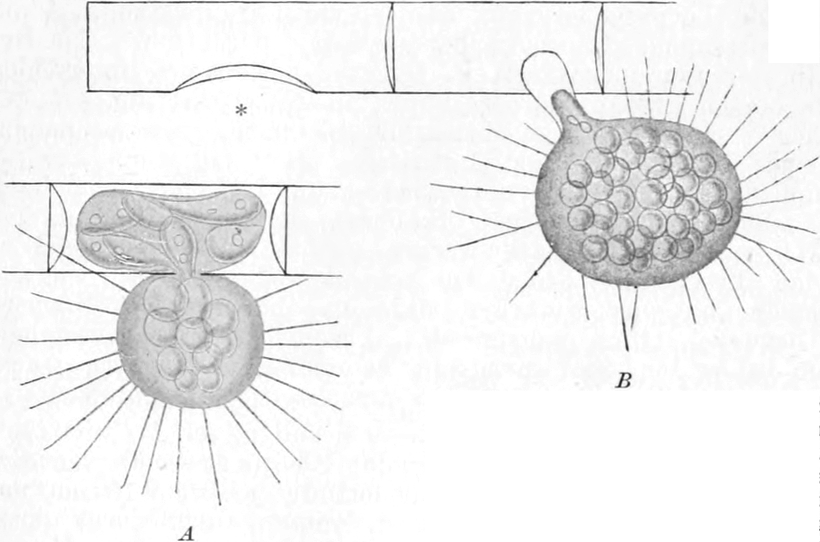
Fig. 59.
Vampyrella Spirogyrae
, eine
Spirogyrazelle anbohrend und aussaugend
.
A
Die Spirogyrazelle ist angebohrt, und der Inhalt tritt in die Vampyrella über.
B
Die Spirogyrazelle ist vollständig ausgesaugt. Bei * eine angebohrte und bereits leergefressene Spirogyrazelle. Nach C
IENKOWSKI
.
B. Die Umsetzung der aufgenommenen Stoffe.
Den Vorgang des Aufbaues der lebendigen Substanz aus den aufgenommenen Nahrungsstoffen bezeichnen wir mit dem Worte „Assimilation“. Unter Assimilation im engeren Sinne wird seit langer Zeit in der Botanik die synthetische Bildung des ersten sichtbaren organischen Stoffes, der Stärke, aus den aufgenommenen organischen Verbindungen in der Pflanze verstanden. Allein es ist zweckmäßig, den Begriff zu erweitern und ihn auch für den Aufbau der komplizierteren organischen Verbindungen, vor allem der komplizierten Eiweißverbindungen, und zwar nicht bloß in der Pflanze, sondern auch im Tiere, zu verwenden. Wir verstehen daher unter Assimilation die Gesamtheit der Prozesse, die zum Aufbau der lebendigen Substanz bis zum Höhepunkt ihrer kompliziertesten Konstitution, der Synthese der Eiweißverbindungen, führen, und können dann dem Aufbau oder der „Assimilation“ den Abbau oder Zerfall als „Dissimilation“ gegenüberstellen.
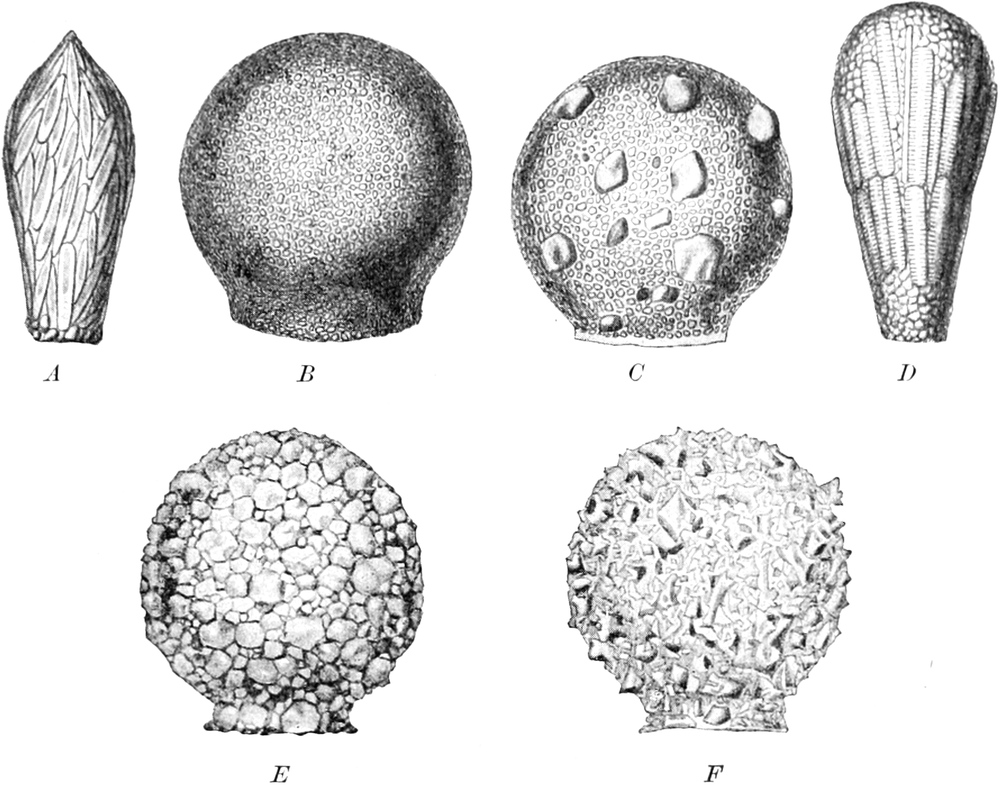
Fig. 60.
Verschiedene Difflugien-Gehäuse
.
A
aus Diatomeenschalen,
B
aus feinen Sandkörnchen,
C
aus feinen und groben Sandkörnchen,
D
aus Diatomeenschalen und Sandkörnchen,
E
aus groben Sandkörnchen,
F
die gleiche Form wie
E
, aus blauen Glassplittern gebaut.
1. Extrazellulare und intrazellulare Verdauung.
„Corpora non agunt nisi soluta.“ Dieser alte Satz spielt im Leben der Zelle eine überaus große Rolle. Damit die aufgenommenen Nahrungsstoffe chemisch wirken und zum Aufbau der lebendigen Substanz verwendet werden können, müssen sie in gelöstem Zustande sein; da aber die vom Organismus aufgenommene Nahrung zum Teil geformte Nahrung ist, muß sie erst in lösliche Formen übergeführt werden, und diesen Vorgang bezeichnen wir als Verdauung. Wir sehen, daß nur wenige Zellen die Fähigkeit haben, geformte Nahrung in sich aufzunehmen; bei diesen sprechen wir dann von einer „intrazellularen Verdauung“, da die Ueberführung der geformten Nahrung in lösliche Verbindungen hier im Innern der Zelle vor sich geht. Die große Mehrzahl der Zellen dagegen kann keine geformte Nahrung in ihren Zellkörper hineinziehen; bei ihnen muß also die Umsetzung der geformten Nahrungsstoffe in lösliche Formen schon außerhalb der Zelle stattfinden, damit eine Aufnahme möglich ist. Wir bezeichnen daher diese Umformung als „extrazellulare Verdauung“ und die Aufnahme der gelösten Nahrung als „Resorption“.
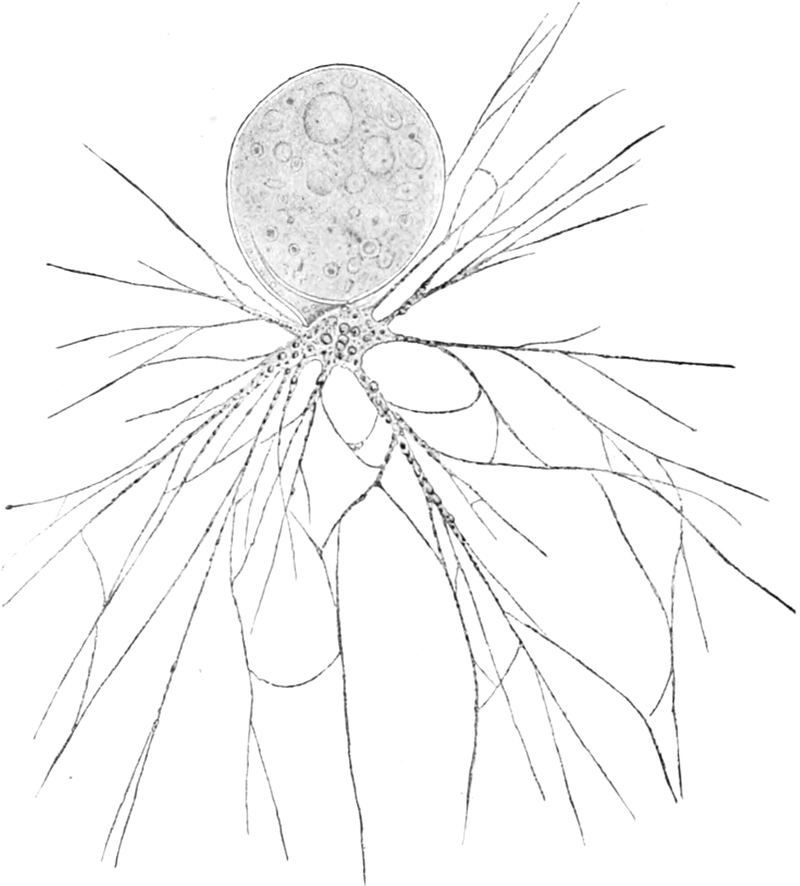
Fig. 61.
Lieberkühnia
, ein Süßwasserrhizopod, aus dessen eiförmiger Schale verzweigte Pseudopodienstränge heraustreten.
Die Ueberführung der geformten Nahrung, wie der geronnenen Eiweißkörper, der Stärke, der Fette etc., in lösliche Verbindungen geschieht durch Einwirkung bestimmter Sekrete, welche der Zellkörper nach außen abgibt. Diese eigentümlichen Sekrete werden „Enzyme“ oder gelöste Fermente genannt. Den Erfolg ihrer Wirkung können wir uns auch außerhalb des Organismus vor Augen führen, indem wir ein Enzym, z. B. das „Pepsin“, das von den Zellen der Magendrüsen produziert wird, auf eine geronnene Eiweißflocke einwirken lassen. Tun wir z. B. in ein Becherglas eine Lösung von Pepsin in Wasser, das wir mit dem gleichen Volumen 0,4-proz. Salzsäure versetzt haben, so sind wir im Besitze eines künstlichen Magensaftes. Wenn wir in diese Verdauungslösung eine Fibrinflocke, d. h. eine Flocke jenes Eiweißkörpers, der durch seine spontane Koagulation die Gerinnung des Blutes außerhalb der Blutgefäße herbeiführt, hineinlegen und das Becherglas in einem Verdauungsofen auf Körpertemperatur erwärmen, so finden wir nach einiger Zeit, daß die feste Fibrinflocke anfängt, aufzuquellen, von außen her durchsichtig zu werden und sich allmählich in der Flüssigkeit aufzulösen. Schließlich ist die ganze Fibrinflocke als solche verschwunden, und wir finden statt ihrer in der Flüssigkeit verteilt Pepton, jenen einfachen Eiweißkörper, der, wie wir bereits früher gesehen haben, durch hydrolytische Spaltung des polymeren Eiweißmoleküls entsteht, in Wasser löslich ist, durch organische Membranen diffundiert und beim Kochen nicht mehr gerinnt. Neben dem Pepton finden wir noch gewisse Uebergangsstufen zwischen dem nativen Eiweiß und dem Pepton, die ebenfalls in Wasser löslich sind und als Albumosen bezeichnet werden. Auf die eigentümliche Wirkungsweise der Fermente selbst werden wir sogleich näher eingehen.
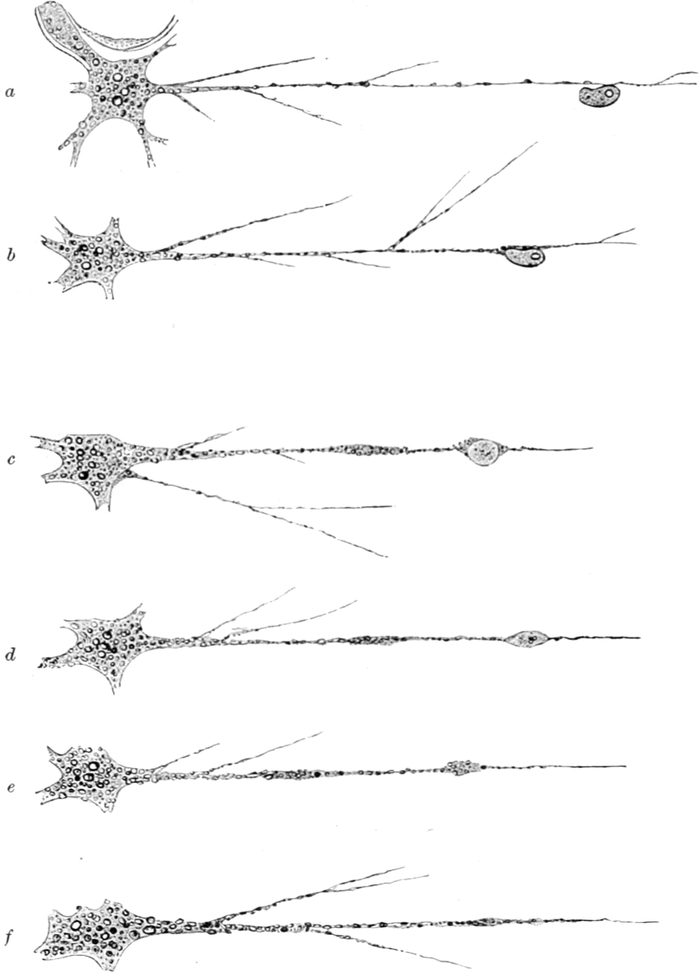
Fig. 62.
Ein lang ausgestrecktes Pseudopodium von Lieberkühnia, auf dem sich ein Infusorium (Colpidium colpoda) gefangen hat
.
a
,
b
,
c
,
d
,
e
,
f
verschiedene Stadien der Verdauung dieses Infusoriums.
Was hier bei der extrazellularen Verdauung außerhalb des Zellkörpers geschieht, was wir sogar im Reagenzglase nachahmen können, das erfolgt bei der intrazellularen Verdauung innerhalb des Protoplasmas. Auch hier können wir den Prozeß verfolgen, und zwar am besten an dem nackten Protoplasmaleib der Rhizopoden. Lieberkühnia ist ein großes Süßwasserrhizopod, aus dessen eiförmiger membranöser Schale durch eine Oeffnung am spitzen Pol dicke, baumartig verzweigte Pseudopodienstränge heraustreten (Fig. 61). Beobachten wir mit dem Mikroskop, wie die Lieberkühnia ein heftig gegen ihre Pseudopodien anschwimmendes Infusorium fängt und verdaut[109], so sehen wir, daß die Beute zuerst an den Pseudopodien hängen bleibt, durch starke Fluchtbewegungen sich immer fester und fester verstrickt und nun allmählich, sei es ganz, sei es teilweise, vom Pseudopodienprotoplasma umflossen wird (Fig. 62). Einige Zeit dauern die Bewegungen des Infusoriums noch fort, bald aber werden sie matter und matter, und gleichzeitig beginnt sich schon seine Körperform zu verändern. Dann sieht man, wie es an Volumen immer mehr abnimmt, während flüssige und körnige Teile seines Protoplasmakörpers auf das Pseudopodienprotoplasma übertreten, sich mit diesem mischen und nicht mehr unterscheidbar dem Zentralkörper der Lieberkühnia zuströmen. So wird allmählich der ganze Körper des Infusoriums aufgelöst, und sein verflüssigter Inhalt mischt sich mit dem Protoplasma der Lieberkühnia, bis nichts Unterscheidbares mehr von ihm übrig geblieben ist. In anderen Fällen der intrazellularen Verdauung wird der Nahrungskörper, wie z. B. bei den Amöben und Infusorien, innerhalb des Endoplasmas von einer Nahrungsvakuole umgeben und in derselben Weise aufgelöst, wie in dem Exoplasma der Lieberkühnia. Sehr interessant sind ferner die Beobachtungen, die Miß GREENWOOD[110] an Infusorien gemacht hat. Sie verfolgte die Schicksale der aufgenommenen Nahrungsmassen bei Vorticellinen, speziell bei Carchesium, und fand dabei, daß sie, während sie ihrer Verdauung unterliegen, einen ganz bestimmten Weg im Zellkörper zurücklegen, nämlich vom Zellpharynx (Fig. 63) nach der Basis der Zelle und schließlich nach der Zellmundöffnung, wo die unverdauten Massen wieder ausgeworfen werden. Dabei ist es sehr bemerkenswert, daß die Nahrungsmassen in der Konkavität, die der wurstförmige Zellkern dem Zellinnern zukehrt, längere Zeit liegen bleiben, um hier hauptsächlich ihre Zersetzung zu erfahren. Es deutet diese Tatsache offenbar auf eine nähere Anteilnahme des Kerns an der Verdauung der Nahrungsmassen in der Zelle hin. Bei Paramaecium hat PÜTTER die Zirkulation des Protoplasmas mit den Nahrungsmassen verfolgt und die nachstehende Zeichnung (Fig. 64) freundlichst zur Verfügung gestellt, auf der die Pfeile den Weg der Strömung angeben.
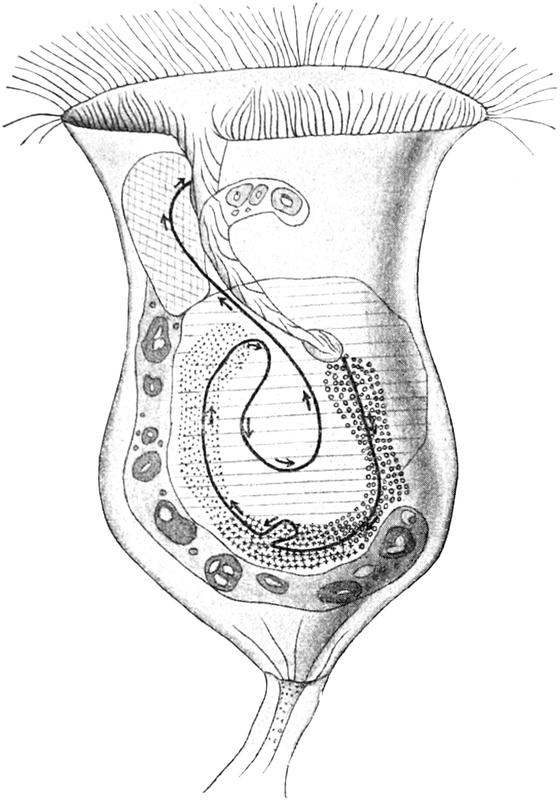
Fig. 63.
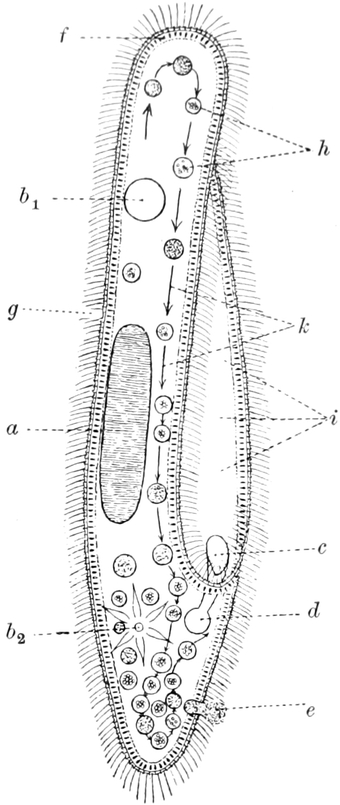
Fig. 64.
Fig. 63. Carchesium polypinum. Schema des Weges, welchen die aufgenommene Nahrung nimmt bis zur Verdauung und zum Auswurf der Exkretstoffe. Die Nahrung tritt durch den Pharynx ein und wird nach unten transportiert (kleine Kreise), wo sie sich in die Konkavität des wurstförmigen Zellkerns (an den dunkleren Einlagerungen zu erkennen) lagert. In der Konkavität des Zellkerns bleibt sie eine Zeitlang in Ruhe (Kreuzchen). Dann wird sie an der anderen Seite nach oben befördert (Punkte) und kommt zurück in den Mittelpunkt der Zelle, wo ihre Auflösung erfolgt. Die Exkrete werden durch die Zellmundöffnung wieder nach außen entfernt. Die schwarze Linie mit Pfeilen gibt die Richtung des Weges an. Nach GREENWOOD.
Fig. 64. Paramaecium aurelia, a Zellkern, b1 und b2 die alternierend pulsierenden Vakuolen (b1 in Diastole, b2 in Systole mit deutlich sichtbaren radiären Abzugskanälchen), c Zellmund, d Zellschlund, e Zellafter, f die Trichocysten, g die Basalkörperchen der Wimpern, h mehr oder weniger veränderte Nahrungsballen, i Peristomfeld, k Pfeile, die den Weg der langsamen Protoplasmaströmung anzeigen. Nach PÜTTER.
Ebenso wie die Eiweißkörper durch das „Pepsin“ in saurer und durch das „Trypsin“ in alkalischer Lösung werden auch die unlöslichen Kohlehydrate, wie Stärke, sowohl bei intrazellularer als bei extrazellularer Verdauung durch die Einwirkung gewisser Enzyme in lösliche Formen übergeführt. Die Stärke ist, wie wir sahen, ein Polysaccharid, das aus der Vereinigung mehrerer Zuckermoleküle in Anhydridform besteht. Bei der Einwirkung der Enzyme, z. B. des „Ptyalins“, des Speichel- und des Pankreassaftes im Tiere oder der „Diastase“ in der Pflanze, wird nun das polymere Stärkemolekül unter Wasseraufnahme in Maltose und diese weiterhin durch die „Maltase“ in die einfachen Traubenzuckermoleküle gespalten, die in Wasser löslich sind. Bei der intrazellularen Verdauung der Infusorien werden die Stärkekörner, wie M. MEISSNER[111] gezeigt hat, von außen her langsam angedaut, so daß sie wie angefressen aussehen (Fig. 65), bis sie schließlich ganz aufgelöst sind. Indessen scheint es nach den ausgezeichneten Untersuchungen von Miß GREENWOOD[112] und MEISSNER (l. c.), daß Rhizopoden, wie z. B. Amöben, obwohl sie gelegentlich Stärke in sich aufnehmen, dieselbe doch nicht zu verdauen imstande sind.
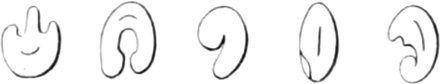
Fig. 65.
Angedaute Stärkekörner
, die von einem Infusorium gefressen und angedaut worden sind. Nach M. M
EISSNER
.
Die Fette endlich werden bei der extrazellularen Verdauung durch das Fettferment, das „Steapsin“, ebenfalls unter Wasseraufnahme gespalten in Glyzerin und Fettsäuren, wovon die letzteren sich mit Alkalien zu Seifen verbinden. Glyzerin sowie Seifen aber sind löslich und können resorbiert werden. Dagegen findet bei der intrazellularen Aufnahme der neutralen Fetttröpfchen als solcher nicht immer eine sofortige Verdauung statt. Wie MEISSNER beobachtet hat, behalten Amöben und Infusorien aufgenommene Fetttröpfchen tagelang unverändert in ihrem Protoplasma, und Miß GREENWOOD hat gefunden, daß Amoeba und Actinosphaerium das aufgenommene Fett überhaupt nicht verdauen.
2. Die Enzyme und ihre Wirkungsweise[113].
Die Enzyme sind eine physiologisch so überaus interessante Gruppe von Körpern, daß es notwendig ist, etwas näher auf sie einzugehen und vor allem ihre eigentümliche Wirkungsweise kennen zu lernen. Wir verstehen nämlich unter Enzymen oder gelösten Fermenten eine Reihe von Stoffen aus dem Tier- und Pflanzenreich, welche die merkwürdige Eigentümlichkeit haben, gewisse chemische Umsetzungen herbeizuführen, ohne selbst dabei verbraucht zu werden. Wenn man mit einer bestimmten Menge eines Enzyms eine große Menge einer chemischen Verbindung gespalten hat, so findet man die ursprüngliche Menge des Enzyms noch unverändert in der Flüssigkeit vor. Unter geeigneten Bedingungen kann man daher mit einer kleinen Menge des Enzyms eine unbegrenzte Menge gewisser Stoffe zerspalten.
Leider sind unsere Kenntnisse vom Wesen der Enzyme und ihrer Wirkungsweise noch immer gering trotz der vielen Erfahrungen, die uns die letzten Jahre gebracht haben und trotz der fortwährenden Verwendung, die der Begriff auf Schritt und Tritt in der Physiologie findet. In letzterer Beziehung möchte man fast von einer geradezu mißbräuchlichen Verwendung sprechen.
Zunächst ist nämlich schon die chemische Natur der Enzyme so gut wie unbekannt. Zwar kann man in manchem Lehrbuch lesen: „Die Enzyme sind komplizierte stickstoffhaltige Verbindungen, die den Eiweißkörpern nahestehen“, aber das ist nichts Besseres als eine Vermutung, und das gleiche gilt von der in neuerer Zeit mehrfach geäußerten Ansicht, daß die Enzyme zur Gruppe der Nukleoproteide gehören. Bis jetzt ist noch kein Enzym mit Sicherheit isoliert worden, geschweige denn in seiner chemischen Zusammensetzung erkannt, selbst nicht einmal die am besten studierten Enzyme der Verdauungssäfte. Auch die neueren Angaben von PEKELHARING[114], daß es ihm gelungen sei, das Pepsin des Magensaftes rein darzustellen, ändern an dieser Tatsache nichts. Wenn PEKELHARING versichert, das Pepsin als chemisches Individuum isoliert zu haben, so kann man ihm das glauben, wenn man will. Einen Beweis für seine Behauptung hat er nicht geliefert, denn es existiert kein Kriterium, auf Grund dessen man wirklich entscheiden könnte, ob das PEKELHARINGsche Pepsin ein chemisches Individuum ist oder ein Gemisch. Nach den Befunden von FRIEDENTHAL und MIYAMOTA[115] läßt sich die Nukleinsäure- wie die Eiweißkomponente entfernen, ohne daß die enzymatische Wirksamkeit des Pepsins oder Trypsins verloren geht. Die Sache liegt hier also genau so zweifelhaft wie bei den verschiedenen Eiweißkörpern, von denen wir ebenfalls nicht mit Gewißheit sagen können, ob sie chemisch einheitliche Verbindungen sind oder Gemische von solchen. Ja, bei vielen Eiweißkörpern steht es sogar vielleicht noch insofern besser, als man allenfalls ihre Kristallisationsfähigkeit für ihren Charakter als chemische Individuen geltend machen kann. Das ist bei den Enzymen nicht einmal der Fall. Aber selbst wenn es gelänge, Enzyme rein zu gewinnen, dann wäre noch immer ihre stereochemische Konstitution zu ermitteln. Davon scheinen wir aber noch weiter entfernt zu sein wie bei den Eiweißkörpern.
Bei diesem Zustande bleibt also nichts übrig, als die Enzyme lediglich durch ihre Wirkung zu charakterisieren und, wie oben gesagt, das Gemeinsame in ihrer Wirkung darin zu sehen, daß sie große Mengen bestimmter chemischer Verbindungen spalten können, ohne selbst dabei verbraucht zu werden.
Bei dieser Charakteristik kommt aber wesentlich die Frage in Betracht, wie man sich diese eigentümliche Wirkungsweise der Enzyme chemisch oder physikalisch zu denken hat. Die alte LIEBIGsche Vorstellung, daß das Fermentmolekül die Schwingungen seiner eigenen Atome auf die der zu spaltenden Verbindung überträgt und dadurch das chemische Gleichgewicht im Molekül dieser Verbindung stört, ist heute wohl gänzlich verlassen worden. Die heutigen Vorstellungen über die Theorie der Enzymwirkungen betrachten als Prinzip derselben die chemische Affinität des Enzymmoleküls zu dem Molekül der Verbindung, auf die es wirkt, und ordnen die Enzymwirkungen ganz allgemein der großen Gruppe von katalytischen Prozessen unter, die wir in ihren einfachsten Fällen schon lange aus der anorganischen Chemie kennen. Um ein Verständnis für einen Vorgang zu gewinnen, ist es immer der zweckmäßigste Weg, denselben in seiner einfachsten bekannten Form zu studieren, und das hat bekanntlich heute zu einem eingehenden Studium der einfachsten katalytischen Prozesse von seiten der physikalischen Chemie geführt. Vor allem hat OSTWALD in dieser Beziehung anregend gewirkt, indem er zunächst versucht hat, den Begriff der Katalyse faßbar zu definieren. Er findet das Wesen der Katalyse in der Geschwindigkeitsänderung eines chemischen Vorganges durch die Gegenwart eines fremden Stoffes, den er „Katalysator“ nennt. „Ein Katalysator ist jeder Stoff, der, ohne im Endprodukt einer chemischen Reaktion zu erscheinen, ihre Geschwindigkeit verändert“[116]. Es ist hier nicht der Ort, die Frage aufzuwerfen, ob diese Definition wirklich allgemein durchführbar ist und vor allem, ob sie sich in dieser so sehr heterogene Dinge zusammenfassenden Form als praktisch erweisen wird. Jedenfalls ist die Analogisierung der Enzymwirkungen mit den einfachsten katalytischen Prozessen der Chemie durch das eingehendere Studium der letzteren von seiten OSTWALDs und seiner Schüler für die Auffassung der ersteren außerordentlich fruchtbar geworden. Besonders die Arbeiten von BREDIG[117], der die Metalle in ihrem kolloiden Zustande direkt als „anorganische Fermente“ bezeichnet, haben eine solche Fülle von interessanten Uebereinstimmungen zwischen diesen und den organischen Enzymen zum Teil neu entdeckt, zum Teil näher beleuchtet, daß man hinsichtlich der Wirkungsweise beider wohl ohne allzuschwere Bedenken das gleiche Prinzip voraussetzen darf.
Das gewöhnlich als Paradigma zitierte Beispiel einer katalytischen Wirkung ist bekanntlich die Katalyse des Wasserstoffsuperoxyds durch Platin. Bringt man in ein trockenes Reagenzglas eine Spur Platinmoor und übergießt man dieses mit einer 1-proz. Wasserstoffsuperoxydlösung (H2O2), so tritt sofort eine heftige Gasentwicklung ein. Kleine Sauerstoffblasen steigen in der Flüssigkeit in ungeheuerer Menge empor und bringen die Flüssigkeit förmlich zum Schäumen. Nach der von BREDIG neuerdings gegebenen Formulierung ist der Vorgang dabei folgender:
1. y H2O2 + n Pt = PtnOy + y H2O, 2. PtnOy + y H2O2 = n Pt + y H2O + y O2.
Das heißt: Das Platin reißt aus dem Molekül des Wasserstoffsuperoxyds ein Atom Sauerstoff heraus, bildet selbst ein Oxyd und gibt beim Hinzutritt neuer Wasserstoffsuperoxydmoleküle wieder Sauerstoff ab, indem derselbe mit dem zweiten Atom Sauerstoff eines Wasserstoffsuperoxydmoleküls sich zu austretenden Sauerstoffmolekülen vereinigt. Schält man aus diesem Vorgang das Prinzip heraus, so liegt es in der Bildung und dem Wiederzerfall eines Zwischenproduktes. Der katalytisch wirkende Stoff fesselt durch seine Affinität einen Bestandteil der Verbindung, die er dadurch spaltet, und gibt denselben an einen Körper mit stärkerer Affinität wieder ab, so daß der Katalysator immer wieder für neue Spaltungen zur Verfügung steht. Interessant ist es, daß man diesen Vorgang durch Zufügung bestimmter chemischer Stoffe hemmen kann, genau so wie gewisse Lebensvorgänge durch bestimmte Narcotica oder Gifte gelähmt werden. Vergiftet man nämlich das Platinmoor mit einigen Tropfen Schwefelammoniumlösung (Ammoniumhydrosulfid, NH4SH), so tritt die Wasserstoffsuperoxydkatalyse gar nicht oder doch nur in sehr schwachem Umfange ein. Genau so wie hier die Wasserstoffsuperoxydkatalyse kann auch eine Menge von enzymatischen Prozessen durch ganz bestimmte chemische Stoffe gehemmt werden.
Das Prinzip der Katalyse ist offenbar ziemlich weit verbreitet. So liegt es z. B. nach der bereits sehr alten und noch immer allgemein gebräuchlichen Auffassung von CLÉMENT und DÉSORMES dem Bleikammerprozeß bei der Herstellung der englischen Schwefelsäure zugrunde, wo die Oxyde des Stickstoffes die Rolle des Katalysators spielen, indem sie einerseits fortwährend Sauerstoff aus der Luft aufnehmen und Salpetersäure bilden, anderseits fortwährend Sauerstoff an die schwefelige Säure abgeben und dieselbe zu Schwefelsäure oxydieren. Auch die Reduktion des Indigblaues zu Indigweiß durch Traubenzucker in einer mit kohlensaurem Natron versetzten Lösung und die fortwährende Reoxydation des Indigweißes zu Indigblau bei Zutritt von Luftsauerstoff beruht jedenfalls auf dem gleichen Prinzip. In diesem Falle ist der Indigofarbstoff der Katalysator. Ferner dürfte hierher gehören die Oxydation des Trimethylamins und seine Reduktion durch reduzierende Substanzen und noch manches andere Beispiel. Indessen sind alle diese Prozesse bisher noch nicht so gründlich auf die bei ihnen ablaufenden Zwischenreaktionen hin durchgearbeitet, daß ihre Auffassung als katalytische Prozesse im Sinne der Platinkatalyse des Wasserstoffsuperoxyds schon genügend gesichert erschiene.
Es soll hier nicht unerwähnt bleiben, daß möglicherweise der Reaktionsmechanismus auch bei der Wasserstoffsuperoxydkatalyse sogar in wesentlich anderer Gestalt sich vollzieht als die hier zugrunde gelegte, schon von TRAUBE vertretene Auffassung ihn darstellt, wonach das Wasserstoffsuperoxyd zugleich Oxydations- und Reduktionsmittel ist. So vertritt MANCHOT nach einer persönlichen Mitteilung seinerseits auf Grund seiner Untersuchungen über die Superoxyde des Eisens und die katalytischen Wirkungen der Eisensalze[118] die Anschauung, daß das Wasserstoffsuperoxyd lediglich peroxydierend auf das Metall wirkt und daß die Sauerstoffentwicklung dann auf einem spontanen Zerfall der Superoxyde beruht. Wie dem aber auch sei, in jedem Falle haben wir dasselbe Prinzip, daß eine bestimmte Verbindung, im vorliegenden Falle ein Metalloxyd, fortwährend zerfällt und sich wieder bildet.
Macht man die Annahme, daß den Wirkungen der Enzyme das gleiche Prinzip zugrunde liegt wie dieser Gruppe von katalytischen Vorgängen, so sind die eigenartigen enzymatischen Prozesse in der organischen Natur auf ein einfaches Schema zurückgeführt. Eine solche Annahme aber hat durchaus nichts gegen sich. Im Gegenteil, sie ist im höchsten Grade wahrscheinlich, wenn sie auch naturgemäß erst ihre endgültige Bestätigung finden kann, nachdem die Enzyme hinsichtlich ihrer chemischen Konstitution genau bekannt und die Zwischenreaktionen bei ihrer Wirkung ermittelt sind.
Bei einer Gruppe von Enzymen wird diese Annahme besonders plausibel.
Die soeben genannten Beispiele von katalytischen Prozessen haben das Gemeinsame, daß bei ihnen der Katalysator die Rolle eines Sauerstoffüberträgers spielt. Infolge seiner Affinität zum Sauerstoff bindet er den Sauerstoff an sich, um ihn an einen Stoff mit größerer Sauerstoffaffinität wieder abzugeben. In diesem Punkte nun besteht eine vollkommene Analogie mit der erst in neuerer Zeit bekannt gewordenen Gruppe von Enzymen, die als „Oxydasen“ bezeichnet zu werden pflegen. Diese Stoffe, wie die Laccase, Tyrosinase, Schinoxydase, Katalase und andere, die besonders im Pflanzenreich, aber auch im Tierkörper eine große Verbreitung zu besitzen scheinen, stimmen in ihrer Wirkung als Sauerstoffüberträger in jeder Hinsicht mit den genannten Katalysatoren vom Typus des Platinmoors überein.
Als eine besonders charakteristische Eigenschaft vieler Enzyme muß man die Eigentümlichkeit betrachten, daß das Enzym immer nur für eine einzige ganz bestimmte chemische Verbindung sich wirksam erweist. EMIL FISCHER, dessen Arbeiten die Lehre von den Enzymen einen besonderen Fortschritt verdankt, hat das Verhältnis zwischen dem Enzymmolekül und der Verbindung, auf die es wirkt, sehr treffend verglichen mit dem Verhältnis zwischen dem Schlüssel und seinem Schloß. Nur der eine einzige Schlüssel, der für das bestimmte Schloß gemacht ist, vermag dasselbe aufzuschließen, und auch nur dieses betreffende Schloß vermag er zu öffnen. Diese spezielle Anpassung geht in einzelnen Fällen so weit, daß die Enzyme nicht einmal auf die isomeren Verbindungen der entsprechenden Körper wirken, auf die sie ihre Wirksamkeit entfalten. So hat EMIL FISCHER z. B. folgende Tatsachen feststellen können. Als er die enzymatische Spaltung von Glykosiden (d. h. Zuckerarten, in denen eine OH-Gruppe durch gewisse Säuren oder Alkohole ersetzt ist) untersuchte, fand er, daß das Emulsin, ein Enzym, das in den bitteren Mandeln in großer Menge enthalten ist, nur das β-Methylglykosid zu spalten imstande ist, nicht aber das α-Methylglykosid, dessen Molekül genau dieselbe chemische Zusammensetzung besitzt wie das erstere, aber mit anderer Lage der Methylgruppe im Molekül. Dagegen vermag die Maltase, ein Enzym, das aus getrockneten und gepulverten Hefezellen gewonnen wird und im Malzextrakt vorkommt, umgekehrt nur das α-Methylglykosid zu spalten, nicht die isomere β-Verbindung.
Einen bedeutenden Impuls erhielt das Studium der Fermente vor wenigen Jahren durch die Untersuchungen E. BUCHNERs. Während man früher ganz allgemein geglaubt hatte, daß die traubenzuckerspaltende Wirkung der Hefezellen (Fig. 10, p. 78 und Fig. 66) an ihr intaktes Leben untrennbar gebunden sei, kurz, daß die Spaltung des Traubenzuckermoleküls in Alkohol und Kohlensäure durch den Stoffwechsel der Zelle selber bewirkt werde, ist es E. BUCHNER gelungen, aus der Hefe einen Preßsaft zu gewinnen, der keine Hefezellen mehr enthält und dennoch, allerdings nur eine Zeitlang, eine starke Gärtätigkeit entfaltet. BUCHNER hat daraus den Schluß gezogen, daß die Alkoholgärung ein rein enzymatischer Prozeß ist und daß die Hefezellen ein Enzym enthalten, die „Zymase“, das nur durch Zertrümmerung des Zellkörpers aus demselben befreit werden kann und außerordentlich labil zu sein scheint. Man hat freilich gegen die BUCHNERsche Annahme der „Zymase“ im Hinblick auf die kurze Wirksamkeitsdauer des Hefepreßsaftes den Einwand erhoben, daß es sich bei der Wirkung des Preßsaftes nicht um ein Enzym, sondern um überlebende Fetzen oder Trümmer des Protoplasmakörpers der Hefezellen handle, allein durch eine Anzahl von schwerwiegenden Kontrollversuchen hat dieser Einwand in letzterer Zeit immer mehr an Gewicht verloren. Dagegen dürften diejenigen wohl vorläufig viel zu weit gehen, die nun im Anschluß an die BUCHNERsche Entdeckung die Ansicht vertreten, daß überhaupt alle Gärungsvorgänge ebenso wie die Alkoholgärung lediglich enzymatische Prozesse seien.
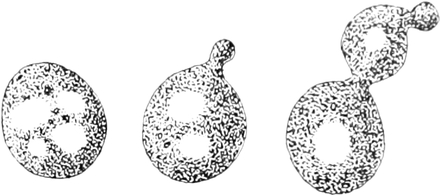
Fig. 66.
Saccharomyces
, Hefezellen. Nach R
EINKE
.
Schließlich sei noch ein Punkt von Wichtigkeit erwähnt, das ist die Frage nach synthetisierenden Enzymen. Fast die ganze erdrückende Fülle von Enzymen, die seit langer Zeit überall in der lebendigen Substanz gefunden worden sind, entfaltet ausschließlich spaltende Wirkungen, und zwar überwiegen hier wieder die hydrolytischen Spaltungen, d. h. Spaltungsprozesse, die unter Aufnahme von Wasser erfolgen. Es wäre aber für die Auffassung der Vorgänge in der lebendigen Substanz von großer Bedeutung, festzustellen, ob es auch Enzyme gibt, die Synthesen vermitteln und die etwa bei den Assimilationsvorgängen in der lebendigen Substanz eine Rolle spielen könnten.
Was zunächst die Möglichkeit solcher synthetisierender Enzymwirkungen betrifft, so muß sie unbedingt zugegeben werden, wenn man den oben angenommenen Reaktionsmechanismus der katalytischen Prozesse, wie das heute wohl allgemein der Fall ist, im Prinzip auch für die enzymatischen Vorgänge als gültig betrachtet. Von dieser Voraussetzung aus ist es offenbar denkbar, daß der bei der Zwischenreaktion vom Enzym gebundene Körper bei seiner Abgabe an einen anderen mit letzterem zusammen sich zu einer komplizierteren Verbindung vereinigen kann, die nicht unmittelbar wieder zerfällt. Um bei dem konkreten Fall der Sauerstoffübertragung durch ein Enzym zu bleiben, so ist es durchaus nicht nötig, daß der vom Enzym an einen Körper mit größerer Sauerstoffaffinität abgegebene Sauerstoff zu einer oxydativen Spaltung des letzteren führt, sondern er kann direkt zum Aufbau eines stabilen Oxyds benutzt werden. Es wäre das im Prinzip der einfachste Fall einer synthetisierenden Wirkung eines Enzyms. In der Tat liefert nun wieder das Beispiel des Platins einen wohlbekannten Beleg für ein solches Vorkommen. Der vom Platin gefesselte Sauerstoff der Luft kann direkt zur Synthese von Wasser verwendet werden, wenn man über Platinschwamm einen Wasserstoffstrom streichen läßt, wie es im DÖBEREINERschen Feuerzeug geschieht. Ebenso vermag das Platin durch Sauerstoffübertragung aus niederen Oxydstufen höhere aufzubauen, z. B. aus schwefliger Säure SO2 Schwefelsäure SO3. Das Platin wirkt hier also genau im Sinne eines Enzyms, indem es, ohne an Menge abzunehmen, eine unbegrenzte Wirksamkeit entfalten kann, aber nicht eine spaltende, sondern eine synthetisierende. Der Ausdruck „Katalyse“, der nach der umfassenden Anwendung, die ihm OSTWALD zu geben sucht, auch diesen Fall einschließt, würde hier, genau genommen, mit dem Vorgang selbst in Widerspruch stehen, denn nicht um eine Katalyse (καταλύω), sondern um eine Synthese (συντίθημι) handelt es sich dabei. In der gleichen Weise aber könnte man sich Synthesen auch durch Enzyme vermittelt denken, und schließlich ebensogut wie die einfachen Synthesen von Oxyden könnte man sich auch kompliziertere Synthesen als Enzymwirkungen vorstellen. Wenn das Enzym nicht wie die Oxydasen bloß Sauerstoff bei der Zwischenreaktion bindet, sondern eine größere Atomgruppe aus dem Verbande eines Moleküls herausreißt und fesselt, um sie in toto oder unter Aufspaltung an ein Molekül mit stärkeren Affinitäten wieder abzugeben, so ist damit die Möglichkeit von komplizierteren Synthesen auf Grund des vorausgesetzten Prinzips der Enzymwirkungen ohne weiteres gegeben.
In der Tat sind nun nach langem vergeblichen Suchen im letzten Jahrzehnt einige Fälle von Synthesen bekannt geworden, die, wie es scheint, durch Enzymwirkungen vermittelt werden. So hat CROFT HILL[119] beobachtet, daß unter dem Einfluß von Hefemaltase in einer Traubenzuckerlösung Maltose oder richtiger, wie EMMERLING[120] bald darauf zeigte, Isomaltose und dextrinähnliche Produkte entstehen, wenn die Lösung lange Zeit stehen bleibt. Eine analoge Beobachtung machten EMIL FISCHER und ARMSTRONG, indem sie unter der Einwirkung von Kefirlaktase aus Galaktose und Traubenzucker Isolaktose entstehen sahen. In konzentrierten WITTE-Peptonlösungen wurde ferner von DANILEWSKI und seinen Schülern unter Einwirkung von Pepsin die Entstehung eines Koagulums, des „Plasteins“ beobachtet, das jedenfalls einen komplexeren Eiweißkörper vorstellt als Albumosen und Peptone. Auch unter Vermittelung von Pankreas-Steapsin schließlich sind Synthesen von Fetten aus Fettsäuren und Glyzerin nachgewiesen worden[119]. Indessen darf doch bei allen diesen Vorgängen nicht übersehen werden, daß der nähere Reaktionsmechanismus noch vollständig unbekannt ist und unbekannt bleiben wird, bis es gelungen ist, den chemischen Aufbau der betreffenden Enzymmoleküle zu ermitteln. Bis dahin läßt sich auch nicht mit Sicherheit sagen, ob das Enzym als solches die Synthese vermittelt, oder ob es nicht vielmehr bloß Reaktionen einleitet, als deren weitere Folgen oder als deren Endresultat sich die betreffenden Synthesen vollziehen, denn wir dürfen nicht vergessen, daß ja die große Masse von Synthesen überhaupt ohne Vermittelung von Enzymen auf ganz anderem Wege sich vollzieht. Es erscheint überhaupt geboten, mit dem Begriff der Enzymwirkung etwas weniger freigebig umzugehen, als das in letzter Zeit vielfach geschehen ist.[121]
3. Assimilation und Dissimilation.
a) Assimilation.
Die Verdauung der Nahrungsstoffe durch die Einwirkung der Fermente ist nur eine Vorbereitung für den Assimilationsvorgang. Erst nachdem die Nahrungsstoffe in den Zustand gebracht worden sind, in dem sie chemisch wirken können, d. h. nachdem sie gelöst worden sind, kann ihre Verwertung zum Aufbau der lebendigen Substanz beginnen.
Der Assimilationsvorgang gestaltet sich naturgemäß je nach der verschiedenen Beschaffenheit der aufgenommenen Nahrung sehr verschieden. Vor allem werden wir entsprechend den Unterschieden, die wir zwischen der Nahrung der Pflanzen und der Nahrung der Tiere kennen gelernt haben, auch Unterschiede in der Assimilation bei beiden Organismengruppen finden müssen. Es liegt auf der Hand, daß die Prozesse, die zum Aufbau der lebendigen Substanz in der Pflanzenzelle führen, eine viel längere Reihe bilden müssen, als die Prozesse der Assimilation in der tierischen Zelle, denn die Pflanze muß aus den einfachsten anorganischen Verbindungen, aus der Kohlensäure, dem Wasser, den Salzen und dem Sauerstoff die hochkomplizierten Eiweißmoleküle aufbauen, während das Tier schon fertige organische Verbindungen, ohne die es nicht leben kann, zugeführt bekommt und diese nun bloß noch in seiner spezifischen Weise umformt. Verfolgen wir die Prozesse, die zur Assimilation der Eiweißkörper führen, soweit sie überhaupt bekannt sind, in beiden Reihen etwas genauer. Die Lückenhaftigkeit unserer Kenntnis wird uns freilich hier fühlbarer als irgendwo sonst.
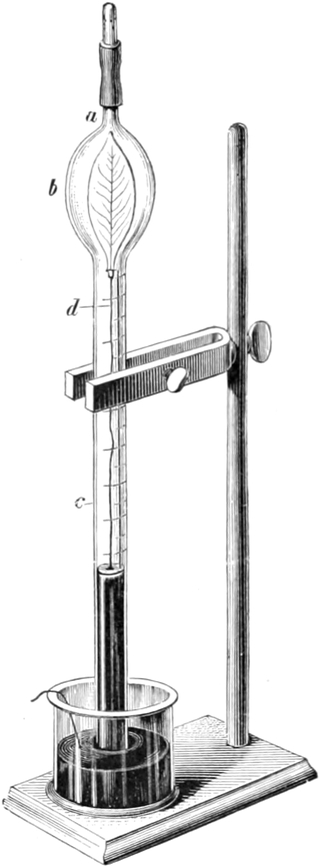
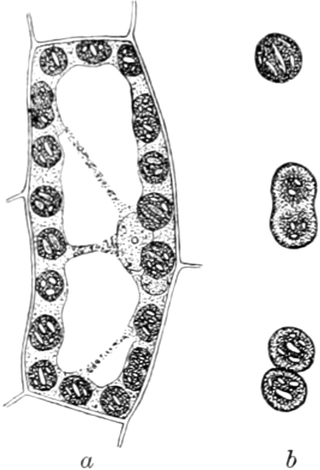
Fassen wir zunächst die Pflanzen ins Auge, so zeigt uns ein einfacher Versuch den ersten Schritt, den die Pflanze tut in der Reihe der Vorgänge, welche die Assimilation vorstellen. In ein oben geschlossenes zylindrisches Kugelrohr (Fig. 67), das nach seinem Volumen graduiert ist, stecken wir vermittelst eines Drahtes ein grünes Blatt und lassen eine bestimmt abgemessene Menge Kohlensäure einströmen. Das Glasrohr schließen wir an seinem unteren Ende mit Quecksilber ab und lassen es einige Stunden am Sonnenlichte stehen. Prüfen wir dann gasanalytisch den Inhalt des Rohres wieder, so stellt sich heraus, daß die Kohlensäure verschwunden und statt dessen ein gleichgroßes Volumen Sauerstoff in dem Glasrohr enthalten ist. Da die Kohlensäure an Volumen gleich dem Volumen des in ihr enthaltenen Sauerstoffs ist, so beweist der Versuch nicht nur, daß die Pflanze die Kohlensäure aufgenommen und Sauerstoff abgegeben hat, sondern er zeigt auch, daß sie ebensoviel Sauerstoff abgegeben hat, wie in der Kohlensäure enthalten war. Der erste Schritt zur Assimilation in der Pflanze ist also eine Spaltung der Kohlensäure, die in der grünen Pflanzenzelle unter dem Einfluß des Sonnenlichts erfolgt. Den Sauerstoff gibt die Pflanze nach außen ab. Ueber das Schicksal des zurückbehaltenen Kohlenstoffs aber gibt uns die mikroskopische Beobachtung Aufschluß. Es zeigt sich nämlich, daß entsprechend der Zersetzung der Kohlensäure in den Chlorophyllkörpern selbst Stärke gebildet wird, die sich in Form kleiner, stark lichtbrechender Körnchen (Fig. 31 III, p. 95 und Fig. 68) ablagert, und SACHS[122] hat durch eine Reihe von Versuchen gezeigt, daß, sobald die Kohlensäurespaltung in der Dunkelheit aufhört, auch die Stärkebildung sistiert wird, um bei Belichtung mit der Zersetzung der Kohlensäure sofort wieder zu beginnen. Da die Stärke außer dem Kohlenstoff nur noch Wasserstoff und Sauerstoff in dem Atomverhältnis von Wasser enthält, so kann also die Stärke nur durch eine Synthese aus dem abgespaltenen Kohlenstoff und dem durch die Wurzeln aufgenommenen Wasser entstanden sein. Die Stärke ist daher das erste sichtbar werdende Assimilationsprodukt.
Fig. 67. Apparat zur Untersuchung der Kohlensäurespaltung in den grünen Pflanzenteilen. Nach DETMER. Fig. 68. Stärke als helle Schüppchen in Chlorophyllkörpern. A Chlorophyllkörper in der Zelle liegend. B Chlorophyllkörper in der Teilung begriffen. Nach SACHS.
Ueber die speziellen Vorgänge bei der Bildung der Stärke herrschen bis heute nur Vermutungen, doch kommt der VON BAEYERschen Hypothese ein so hoher Wahrscheinlichkeitsgrad zu, daß sie die allgemeinste Annahme gefunden hat. Nach dieser Hypothese VON BAEYERs verbindet sich der aus der Spaltung von Kohlensäure (CO2) freiwerdende Kohlenstoff (C) im Moment des Freiwerdens mit dem durch die Wurzeln aufgenommenen Wasser (H2O) zu einem Molekül Formaldehyd (CH2O). Es wäre also nach dieser Hypothese der Formaldehyd das erste synthetische Produkt der Pflanzenzelle. Indem sich nun sechs Formaldehydmoleküle durch Aneinanderkettung (Polymerisation) miteinander zu einem komplexeren Molekül vereinigen, entsteht ein Monosaccharidmolekül, wahrscheinlich der Traubenzucker (C6H12O6). Die Synthese des Traubenzuckers wäre also der zweite Schritt zur Bildung der Stärke. Aus ihm entsteht wiederum durch Polymerisation, indem sich eine Anzahl Traubenzuckermoleküle je unter Austritt eines Moleküls Wasser miteinander verketten, die Stärke (C6H10O5)n. Der ganze Vorgang der Assimilation der Stärke spielt sich also nach dieser Hypothese etwa in folgender Weise ab:
CO2 + H2O = CH2O + O2
6 (CH2O) = C6H12O6
n (C6H12O6 − H2O) = (C6H10O5)n.
Dabei ist zu berücksichtigen, daß die Stärke nur die Reservematerialform der Kohlehydrate ist, daß sie aber im Bedarfsfalle, sobald Kohlehydrate aktiv im Stoffwechsel Verwendung finden, wieder in die Monosaccharidmoleküle gespalten wird.
In neuester Zeit hat der Elektrochemiker WALTER LÖB[123] interessante Versuche angestellt, die möglicherweise einmal weiteres Licht auf den spezielleren Mechanismus der Kohlehydratassimilation werfen dürften. Er hat, wie schon andere Forscher, die sogenannte „stille elektrische Entladung“, wie sie z. B. in GEISSLERschen Röhren erfolgt, als Energieform für chemische Synthesen verwendet, und es ist ihm auf diesem Wege zum ersten Male gelungen, aus Kohlensäure und Wasser synthetisch Formaldehyd und andere den Kohlehydraten nahestehende Verbindungen wie Glykolaldehyd aufzubauen. Dadurch gewinnt die Hypothese A. VON BAEYERs zum ersten Male eine starke experimentelle Stütze. WALTER LÖB stellt sich vor, daß unter diesen Bedingungen Kohlensäure und Wasser zunächst in Kohlenoxyd, Wasserstoff und Sauerstoff gespalten wird, und daß dann aus dem so entstehenden Kohlenoxyd und dem freiwerdenden Wasserstoff der Formaldehyd und daneben Glykolaldehyd sich aufbaut, aus denen dann durch Polymerisierung Traubenzucker entstehen könnte nach folgendem Schema:
CO2 + H2 = CO + H2 + O2
H2 + CO = H2CO
2 (H2 + CO) = CH2OH·COH
6 H2CO = C6H12O6
3 CH2OH·COH = C6H12O6
Wenn nun auch die stille elektrische Entladung nicht ohne weiteres in ihrer Wirkung mit dem Licht, das in der Pflanze als Energiequelle dient, identifiziert werden darf, und wenn auch die Rolle, die das Chlorophyll dabei spielt, und die nach LÖB die eines Katalysators sein soll, zunächst noch etwas dunkel bleibt, so ist es doch immer von großem Interesse, einen dem Assimilationsprozeß vergleichbaren Vorgang gefunden zu haben, bei dem aus Kohlensäure und Wasser synthetische Produkte entstehen, die man auf dem Weg zur Traubenzuckersynthese in der Pflanzenzelle seit langer Zeit als Zwischenstationen gefordert hat. Sicherlich wird hier die nächste Zukunft uns einen wesentlichen Schritt vorwärts führen.
„Wenn die Stärke“, sagt SACHS[124], „das einzige und erste sichtbare Assimilationsprodukt ist, so folgt ohne weiteres, daß alle übrigen organischen Verbindungen der Pflanze durch chemische Metamorphosen aus ihr hervorgegangen sein müssen.“ In der Tat, erinnern wir uns an die Zusammensetzung der künstlichen Nährlösung, in der wir die Pflanze wachsen ließen[125], so wissen wir, daß in ihr kein Kohlenstoff enthalten war. Wenn also die Pflanze späterhin andere Kohlehydrate, Fette und schließlich Eiweißkörper bildet, die sämtlich Kohlenstoff enthalten, so kann sie dazu nur die Stärke als Ausgangspunkt benutzen. Freilich wissen wir über die speziellen chemischen Umsetzungen, welche die Stärke weiter erfährt, fast nichts Genaues. Allein wir können uns wenigstens in großen Zügen eine Vorstellung von den weiteren Assimilationsvorgängen bilden. Daß aus der Stärke lösliche Zuckerarten durch hydrolytische Spaltung sehr leicht entstehen können, ist ohne weiteres verständlich, wenn wir daran denken, daß ja die Stärke ein polymeres Zuckeranhydridmolekül vorstellt. So kann also die Stärke in den Zustand der löslichen Kohlehydrate übergehen, der notwendig ist, um weitere chemische Synthesen zu ermöglichen. Auch die Bildung von fetten Oelen aus Stärke läßt sich noch empirisch nachweisen. Wenn man unreife Samen von gewissen Pflanzen, z. B. Paeonia, die nur Kohlehydrate und kein Fett enthalten, an feuchter Luft liegen läßt, findet man nach einiger Zeit, daß alle Stärke verschwunden, statt dessen aber Oel entstanden ist. Viel komplizierter dagegen ist die Entstehung des Eiweißes aus den Kohlehydraten. Da das Eiweiß außer den Atomen der Kohlehydrate noch Stickstoff und eventuell auch Schwefel enthält, den die Pflanze durch die Wurzeln nur aus den salpetersauren und schwefelsauren Salzen bezieht, so müssen hier erst komplizierte Umsetzungen stattfinden, deren Einzelheiten sich unserer Kenntnis bisher noch vollständig entziehen. Zweifellos ist es aber heute, daß auf dem Wege zur Eiweißsynthese erst die Bildung von Aminosäuren erfolgen muß, aus denen sich weiterhin das Eiweißmolekül durch Polymerisation zusammensetzt. Jedenfalls wissen wir jetzt sicher, daß in keimenden Pflanzen Aminosäuren reichlich vorhanden sind, die von der wachsenden Pflanze zum Aufbau von Eiweißkörpern verwendet werden. Wie schließlich das synthetisch gebildete Eiweißmolekül zum Aufbau von lebendiger Substanz verwertet wird, darüber können wir bei unserer äußerst mangelhaften Kenntnis des Stoffwechsels der Zelle bis jetzt noch nicht das Geringste aussagen. Hier eröffnet sich der künftigen physiologischen Forschung ein ungeheuer weites Gebiet.
Bei den Tieren ist der Weg von der aufgenommenen Nahrung bis zu den Eiweißverbindungen der lebendigen Substanz naturgemäß wesentlich kürzer, denn alle Tiere ohne Ausnahme bedürfen schon fertiger Eiweißkörper oder wenigstens ihrer Konstituenten, der Aminosäuren, zu ihrer Ernährung. Es fragt sich aber, was mit den als Nahrung aufgenommenen Eiweißkörpern weiter geschieht. Zunächst ist seit langer Zeit bekannt, daß die nativen Eiweißkörper durch die Verdauungsenzyme des Magen- und Pankreassaftes hydrolytisch in Albumosen und Peptone gespalten werden. Auch wußte man schon, daß das Trypsin des Pankreassaftes bei längerer Einwirkung im Reagenzglase das Eiweißmolekül in noch einfachere Bruchstücke zerlegen kann, nämlich in eine Reihe von Aminosäuren wie Leucin, Tyrosin, Asparaginsäure, und KUTSCHER und SEEMANN[126] haben den Nachweis geführt, daß auch im lebenden Darm bereits solche Aminosäuren als Produkte der Eiweißverdauung auftreten. Neuerdings hat nun COHNHEIM[127] gefunden, daß von der Darmwand ein eigenes Enzym produziert wird, das „Erepsin“, das die durch die Pankreastrypsinverdauung entstandenen Peptone sehr schnell bis zu ihren Aminosäuren aufspaltet, während es auf das native Eiweißmolekül nicht einwirkt. Es gewinnt dadurch immer mehr den Anschein, als ob im Verdauungsakt des Tierkörpers überhaupt alles Eiweiß bis zu Aminosäuren aufgespalten wird, ehe es der Resorption unterliegt. Die oben angeführten Versuche von LÖWI haben schließlich gezeigt, daß der Tierkörper die Fähigkeit hat, ebenso wie der Pflanzenkörper aus Aminosäuren wieder Eiweiß aufzubauen, und es fragt sich nun, wo diese Synthese stattfindet. Schon nach den Untersuchungen von SALVIOLI[128], HOFMEISTER[129], NEUMEISTER[130] und anderen konnte kein Zweifel mehr bestehen, daß die Peptone als solche auf ihrem Wege durch die Darmwand wieder umgewandelt werden. Bringt man nämlich Stücke der Darmschleimhaut eines Kaninchens in eine Peptonlösung, in der die Zellen der Darmwand eine Zeitlang am Leben bleiben, so findet man nach einiger Zeit, daß alles Pepton verschwunden ist. Spritzt man dagegen eine Peptonlösung einem Tiere ins Blut, so wird in kurzer Zeit die ganze Peptonmenge unverändert durch den Harn wieder ausgeschieden, und im normalen Leben ist das Blut immer frei von Peptonen. Diese beiden Versuche beweisen unzweifelhaft, daß die Peptone als solche nicht in die Zirkulation gelangen, und das gleiche gilt von den Aminosäuren. Alle Versuche, Aminosäuren im Blutstrom nachzuweisen, sind negativ ausgefallen. Wir werden uns also wohl vorstellen müssen, daß die Spaltungsprodukte des Nahrungseiweißes auf dem Wege durch die Darmwand nach der Resorption von den Darmepithelzellen wieder zu nativem Eiweiß zusammengesetzt werden, jetzt aber zu den charakteristischen Eiweißkörpern des Blutes, vor allem zu Globulinen, die dann an das Blut abgegeben werden. Hier, mit dem Blutstrom, zirkuliert dieses gelöste Eiweiß im ganzen Körper, umspült die Zellen aller Gewebe und wird von den Zellen dem Blute entnommen. In den Zellen schließlich wird das Eiweiß zum Aufbau der lebendigen Substanz verbraucht, um dann im Stoffwechsel wieder zu zerfallen, was daraus hervorgeht, daß alles über eine bestimmte Quantität hinaus in den Körper aufgenommene Eiweiß in auffallend kurzer Zeit in seiner ganzen Menge als Harnstoff, Harnsäure etc. im Harn erscheint. Früher glaubte man, daß der Zerfall des zirkulierenden Eiweißes im Blute, in den Körpersäften erfolge[131]. Später aber haben PFLÜGER und SCHÖNDORFF[132] durch sehr genaue Untersuchungen gezeigt, daß der Zerfall des im Blute gelösten Eiweißes nicht im Blute selbst, sondern in den Zellen der Gewebe stattfindet, daß also der Eiweißzerfall durch den Stoffwechsel der lebendigen Zelle veranlaßt wird. Einen geringen Teil des im Blute gelösten Eiweißes halten indessen unter Umständen auch die Zellen fest, um ihn, wie beim Wachstum, zur Vermehrung ihrer lebendigen Substanz zu benutzen, oder um ihn, wie bei der Mästung, in Form von Reserveeiweiß im Protoplasma aufzuspeichern. Solches passives, indifferentes Reserveeiweiß kann unter bestimmten Bedingungen, wie z. B. beim Hungern oder bei der Entwicklung der Eier, wieder in den Stoffwechsel hineingezogen werden. Das Vitellin in den Eizellen ist ein derartiger Stoff.
Ueber die Verwendung der aufgenommenen Fette und Kohlehydrate zum Aufbau der lebendigen Substanz weiß man ebensowenig etwas Eingehenderes wie über die entsprechende Verwendung der Eiweißkörper. Das Fett, das als solches in die Zellen aufgenommen ist, bleibt häufig lange Zeit als Reservematerial liegen. Auch kann das vorher in Glyzerin und Fettsäuren gespaltene und in dieser Form resorbierte Fett in der Zelle wieder in neutrales Fett zurückverwandelt werden, wie aus den ausgezeichneten Versuchen von J. MUNK[133] hervorgeht, der ausgehungerte und völlig abgemagerte Hunde durch Fütterung von fettfreien Seifen oder auch freien Fettsäuren wieder zum Ansatz von Gewebefett brachte. In gleicher Weise kann der aus den Kohlehydraten durch enzymatische Spaltung hervorgegangene und im Ueberschuß vorhandene Traubenzucker in den Gewebezellen, vor allem in den Zellen der Leber und der Muskeln, synthetisch in Glykogen verwandelt und als solches abgelagert werden. Ueber das weitere Schicksal dieses abgelagerten Fettes und Glykogens aber wissen wir nur, daß es beim Hungern und bei angestrengter Muskelarbeit von den Zellen in ihrem Stoffwechsel wieder gespalten und verbraucht wird, daß es also ein Reservematerial vorstellt, das den Zellen des Körpers in Fällen des Bedarfs jederzeit zur Verfügung steht.
b) Dissimilation.
Noch weit spärlicher als vom Assimilationsprozeß sind unsere Kenntnisse von den Vorgängen bei der Dissimilation der lebendigen Substanz. Eigentlich wissen wir nur, daß sich die lebendige Substanz fortwährend von selbst zersetzt, denn das geht aus der Abgabe der Zerfallsprodukte hervor. Welche Wege aber der Zerfall z. B. von den komplizierten Eiweißverbindungen der Zelle bis zu den Endprodukten einschlägt, welche speziellen chemischen Umsetzungen bei diesem „Abbau“ der Eiweißverbindungen stattfinden, davon haben wir begreiflicherweise nur ganz mangelhafte Kenntnis, da wir ja die chemische Zusammensetzung der Eiweißkörper selbst noch sehr wenig kennen.
Eine Tatsache aber wissen wir jetzt wenigstens sicher, das ist die, daß die meisten von allen denjenigen Stoffen, die aus dem Zerfall der Eiweißverbindungen stammen, nicht einfach abgespaltene Atomgruppen sind, die schon vorher als solche im Molekül präformiert waren, sondern daß sie erst durch Synthesen entstehen, sei es im Moment des Zerfalls durch Umlagerung der Atome im Molekül der Eiweißverbindungen selbst, wie wir es z. B. von der Kohlensäure annehmen, sei es erst später außerhalb des Moleküls durch Vereinigung mit anderen Spaltungsprodukten und gleichzeitiger Umlagerung der Atome, wie es z. B. bei der Bildung des Harnstoffs der Fall ist. Von keinem einzigen Zerfallsprodukt der Eiweißkörper bezw. ihrer Verbindungen aber wissen wir bisher, daß es durch einfache Abspaltung präformierter Atomgruppen entstände.
Es ist wichtig, wenigstens die wesentlichsten Abkömmlinge der zerfallenden Eiweißverbindungen der Zelle kennen zu lernen. Wie wir schon bei der Untersuchung der Stoffe fanden, die in der lebendigen Substanz enthalten sind[134], können wir unter den Zersetzungsprodukten der lebendigen Substanz zwei große Gruppen unterscheiden, stickstoffhaltige und stickstofffreie Verbindungen. Von beiden Gruppen entstehen Vertreter in jeder Zelle, nur kann ihre spezielle Zusammensetzung im einzelnen Falle je nach dem charakteristischen Stoffwechsel der Zelle verschieden sein.
Unter den stickstoffhaltigen Stoffen sind die am weitesten verbreiteten der Harnstoff, die Harnsäure, die Hippursäure, das Kreatin, sowie die Nukleinbasen: Xanthin, Hypoxanthin oder Sarkin, Guanin und Adenin. Von der Mehrzahl dieser Stoffe ist es bisher nicht bekannt, wie sie aus dem Zerfall der Eiweißkörper oder ihrer Verbindungen hervorgehen, doch haben wir für einige wenigstens Vermutungen über ihre unmittelbaren Vorstufen. So wird man z. B. aus der Tatsache, die SCHRÖDER fand, daß kohlensaures Ammon, in die frisch herausgeschnittene, noch lebendige Leber eines Hundes geleitet, als Harnstoff die Leber wieder verläßt, zu der Vermutung geführt, daß das kohlensaure Ammon die Vorstufe des Harnstoffs sei, aus dessen Molekül die Leberzellen durch Umlagerung der Atome unter Austritt von zwei Molekülen Wasser Harnstoff bereiten:
(NH4)2CO3 − 2 H2O = (NH2)2CO.
Allein wenn es auch zweifellos ist, daß die Leberzellen aus kohlensaurem Ammon Harnstoff zu bereiten vermögen, so ist doch damit noch nicht gesagt, daß aller Harnstoff auf diesem Wege entsteht. In der Tat wissen wir, daß auch nach Ausschaltung der Leber noch Harnstoff im Tierkörper gebildet wird. Es muß also noch andere Wege der Harnstoffbildung im Körper geben, die uns bisher noch nicht näher bekannt geworden sind. Kaum viel besser steht es um unsere Kenntnis der Harnsäurebildung. Bei Reptilien und Vögeln stellt die Harnsäure denjenigen Stoff vor, in welchem die Hauptmasse des aus dem Eiweißzerfall stammenden Stickstoffs den Körper verläßt. Bei diesen Tieren ist die Vorstufe der Harnsäure das milchsaure Ammon. Aus Versuchen, die GAGLIO[135] an Hunden anstellte, geht hervor, daß die Milchsäure des Blutes aus dem Zerfall von Eiweiß stammt, denn der Milchsäuregehalt des Blutes steigt und sinkt mit der Menge der Eiweißnahrung und ist, wie es scheint, unabhängig von der Menge der eingenommenen Kohlehydrate. Während sich nun im Blute stets Milchsäure findet, ist im Harn unter normalen Verhältnissen keine Spur vorhanden; die Milchsäure muß also eine Umsetzung erfahren, ehe sie ausgeschieden wird. Diese Verhältnisse klärte MINKOWSKI[136] durch einen Versuch auf, indem er zeigte, daß Gänse nach Exstirpation ihrer Leber nur noch ganz unbedeutende Mengen von Harnsäure ausscheiden, dafür aber große Mengen von Milchsäure und Ammoniak, und zwar letztere beide in den Mengenverhältnissen des milchsauren Ammons. Aus dieser wichtigen Tatsache schließt MINKOWSKI mit Recht, daß das milchsaure Ammon bei den Vögeln die Vorstufe für die Bildung der Harnsäure sei, aus der durch Umlagerung Harnsäure entstehe. Wie weit dieser Weg der Harnsäurebildung auch für andere Tiere in Betracht kommt, läßt sich vorläufig nicht sagen, aber wir können heute wohl mit größter Wahrscheinlichkeit annehmen, daß außerdem bei allen Organismen, bei denen Harnsäure gebildet wird, Harnsäure auch als ein Umsetzungsprodukt der Nukleine des Zellkerns auftritt. Die Nukleinbasen gehören zu der Gruppe der Purinkörper und das gleiche ist mit der Harnsäure der Fall. Die Harnsäure stellt ein Oxydationsprodukt des Purins vor, ein Trioxypurin, und entsteht zweifellos aus dem oxydativen Zerfall der Kernnukleine, und zwar teils der Zellkerne der lebendigen Zelle selbst, teils der mit der Nahrung aufgenommenen Gewebezellen. Von der Hippursäure, die besonders im Stoffwechsel der Pflanzenfresser entsteht, können wir dagegen mit Bestimmtheit die Synthese angeben. Hippursäure wird beim Kochen mit Mineralsäuren oder Alkalien unter Wasseraufnahme in Benzoesäure und Glykokoll gespalten, und diese letzteren beiden können durch Erhitzen unter hohem Druck wieder zu Hippursäure unter Wasseraustritt vereinigt werden. Man wird also schon daraus auf die Vermutung geführt, daß auch im Körper der Pflanzenfresser, wo die Möglichkeit der Entstehung einerseits von Benzoesäure aus Eiweiß oder den aromatischen Verbindungen der Nahrung, anderseits von Glykokoll aus leimgebenden Substanzen, die vom Eiweiß abstammen, gegeben ist, die Hippursäure aus diesen beiden Substanzen synthetisch gebildet wird. In der Tat kann man nicht nur im Körper der Pflanzenfresser, sondern sogar auch der Fleischfresser die Hippursäurebildung künstlich hervorrufen, wenn man Benzoesäure in den Magen einführt. Der Körper liefert dann das nötige Glykokoll selbst und bildet damit Hippursäure. Auch über den Ort der Hippursäurebildung wissen wir genau Bescheid. Es ist, wie BUNGE und SCHMIEDEBERG[137] zuerst nachgewiesen haben, die Niere und neuerdings ist es sogar CRAMER und BASHFORD[138] gelungen, mit Nierenbrei als Vermittler aus Benzoesäure und Glykokoll Hippursäure außerhalb des Tierkörpers zu gewinnen. Daraus aber, wie es mehrfach geschehen ist, schon den Schluß zu ziehen, daß die Hippursäuresynthese in der Niere ein enzymatischer Prozeß sei, ist mindestens voreilig. Von der Entstehung des Kreatins ist uns wiederum noch gar nichts näheres bekannt. Wahrscheinlich steht es zum Guanidin in näherer genetischer Beziehung. Das Kreatin und das aus ihm durch Wasseraustritt hervorgehende Kreatinin ist derjenige Stoff, in dem die Muskelzellen die Hauptmasse des aus dem Zerfall ihrer lebendigen Substanz hervorgehenden Stickstoffs abgeben. Allein man weiß auch über das Schicksal des Kreatins nach seiner Entstehung ebensowenig, wie über seine Entstehungsgeschichte selbst; denn obwohl das Kreatin in beträchtlichen Mengen in den Muskeln zu finden ist, treten nur geringe Mengen davon im Harn auf. Es scheint also noch in irgendeiner Weise Umsetzungen im Körper selbst zu erfahren. Auch von den Nukleinbasen schließlich wissen wir nur, daß sie aus dem Zerfall der Nukleine und ihrer Abkömmlinge stammen; durch welche Umlagerungen sie aber daraus hervorgehen, wissen wir vom Xanthin und Hypoxanthin ebensowenig wie vom Guanin und Adenin.
Von den stickstofffreien Umsetzungsprodukten der Eiweißverbindungen in der lebendigen Substanz sind die wichtigsten: Fette, Kohlehydrate, Milchsäure und Kohlensäure. Auch diese entstehen nicht durch einfache Abspaltung aus dem Eiweißmolekül, sondern durch Umlagerung und synthetische Prozesse. Daß im Tierkörper Fett durch Umsetzungen aus Eiweiß entstehen kann, ist schon früher viel bezweifelt worden und wird noch heute von PFLÜGER im Gegensatz zu VOIT und anderen Physiologen energisch bestritten. Der pathologische Prozeß der sogenannten Fettmetamorphose der Zellen, bei dem sich im Protoplasma Fetttröpfchen anhäufen, bis die Zellen am Ende des Krankheitsprozesses tot und von Fett erfüllt sind, mußte zwar eine unbefangene Auffassung zunächst zu der Vorstellung führen, daß hier das Eiweiß sich in Fett umwandele. Aber man konnte den Einwand machen, daß das Eiweiß der Zelle im Verlauf der Krankheit nur durch von außen eindringendes Fett verdrängt werde. Man hat daher diese wichtige Frage experimentell geprüft, und es schien, als ob die Experimente zugunsten der ersten Ansicht sprächen. LEO[139] benutzte die Tatsache, daß Phosphorvergiftung eine ungemein schnell eintretende Fettmetamorphose, besonders der Leberzellen, hervorruft, zu einem Experiment. Er wählte aus einer Anzahl von Fröschen gleicher Größe und gleichen Gewichts sechs Individuen aus, tötete sie und bestimmte ihren Fettgehalt. Darauf nahm er sechs andere Individuen, vergiftete sie mit Phosphor und tötete sie nach drei Tagen. Die Fettbestimmung ergab einen bedeutend größeren Gehalt an Fett als bei den sechs ersten Fröschen. Dieser Versuch schien zu zeigen, daß in der Tat Fett bei der Phosphorvergiftung entstanden ist. Einen Versuch, der aber mehr direkt auf die Entstehung von Fett aus Eiweiß hinzudeuten schien, stellte FRANZ HOFMANN[140] an. Er nahm einen Haufen von Eiern der Schmeißfliege (Musca vomitoria) und teilte ihn auf der Wagschale in zwei gleich schwere Portionen. Eine dieser Portionen benutzte er, um den Fettgehalt zu bestimmen, die andere setzte er auf Blut, dessen geringer Fettgehalt ebenfalls bestimmt war. Die aus diesen Eiern auskriechenden Fliegenmaden nährten sich von dem Blut, wuchsen und wurden groß. Nachdem sie ausgewachsen waren, bestimmte HOFMANN ebenfalls ihren Fettgehalt, und da stellte sich heraus, daß sie zehnmal so viel Fett enthielten, als die Eier und das Blut zusammengenommen. Der Blutzucker kam wegen seiner geringen Menge nicht für die Fettbildung in Betracht. Man schloß also, daß das Fett nur aus dem Eiweiß des Blutes entstanden sein könnte. Allein es ist bei allen diesen älteren Versuchen bezweifelt worden, ob die angewendeten Untersuchungsmethoden auch zuverlässig waren. Indessen haben auch die neueren, in größerer Zahl erschienenen Arbeiten über diese Frage noch keine endgültige Entscheidung zu bringen vermocht, wie die eingehenden Sammelreferate, die F. KRAUS und RIBBERT auf der Kasseler Naturforscher-Versammlung im Jahre 1903 gegeben haben, sowie die sich daran anschließenden Vorträge[141] deutlich erkennen ließen. Auf Grund der neueren Erfahrungen kann man heute nur mit einer gewissen Wahrscheinlichkeit annehmen, daß im Tierkörper aus Eiweiß kein Fett gebildet wird, und daß es sich bei der Fettmetamorphose, die sich unter pathologischen Verhältnissen in manchen Organen entwickelt, wohl immer um eine Fetteinwanderung, um einen Fetttransport von anderen Fettdepots in die betreffenden Gewebezellen handelt. Dagegen ist es vom Pflanzenkörper niemals bezweifelt worden, daß hier Fett aus Eiweißverbindungen entsteht. Die Pflanze und viele niedere Organismen vermögen unbestreitbar durch ihren Stoffwechsel Fette und Oele aus Eiweißverbindungen durch chemische Umsetzungen zu bilden.
Ueber die Entstehung von Kohlehydraten (Traubenzucker und Glykogen) aus Eiweiß kann kein Zweifel herrschen. Schon lange weiß man, daß bei schweren Formen der Zuckerkrankheit (Diabetes mellitus) selbst bei vollständigem Fehlen der Kohlehydrate in der Nahrung mit der Steigerung der genossenen Eiweißmenge auch die im Harn bei dieser Krankheit ausgeschiedene Menge von Traubenzucker bedeutend vermehrt wird. Desgleichen hat schon CLAUDE BERNARD beobachtet, daß bei Hunden, die durch Hungern glykogenfrei gemacht waren, Glykogen in größerer Menge wieder abgelagert wird, wenn sie reichlich mit reiner Eiweißnahrung gefüttert werden, und MEHRING[142] fand bei einem Hunde, der nach 21-tägigem Fasten vier Tage lang mit reinem Fibrin gefüttert worden war, über 16 g Glykogen in der Leber. Aehnliche Beobachtungen sind zahlreich gemacht worden, so daß jetzt die Entstehung von Kohlehydraten aus Eiweißverbindungen im Tierkörper sichergestellt ist. Das ist auch um so weniger zu bezweifeln, als ja auch außerhalb des Körpers aus gewissen Eiweißkörpern Kohlehydrate gewonnen werden können[143]. Die Entstehung von Milchsäure aus Eiweiß haben uns schon die Untersuchungen von GAGLIO[144] bewiesen, aus denen hervorgeht, daß der Milchsäuregehalt des Blutes nur von der Menge des genossenen Eiweißes, nicht der aufgenommenen Kohlehydrate abhängt. Daß schließlich auch die Kohlensäure, welche die lebendige Substanz ausatmet, aus der Zersetzung von Eiweißverbindungen und nicht etwa von stickstofffreien Stoffen hervorgeht, ist ohne weiteres aus der Tatsache ersichtlich, daß bei den Fleischfressern das Leben dauernd mit Eiweißnahrung allein erhalten werden kann. Ueberhaupt beweist diese wichtige Tatsache, daß aus dem Eiweiß der Nahrung sowohl alle diejenigen Stoffe gebildet werden können, welche fortwährend vom Organismus ausgeschieden werden, als auch alle die Stoffe, welche notwendig sind, um das Leben dauernd zu unterhalten.
Man hat früher einen scharfen Unterschied zwischen tierischen und pflanzlichen Zellen auf der Art der chemischen Umsetzungen begründen wollen, die in beiden Organismenformen verlaufen, und hat gesagt: in den Pflanzen finden fast ausschließlich Synthesen, in den Tieren nur Spaltungsprozesse statt, eine Auffassung, die sich bis in die neuere Zeit hinein mitgeschleppt hat. Allein schon vor mehr als 30 Jahren hat PFLÜGER[145] bestritten, daß ein solcher prinzipieller Unterschied bestehe. In der Tat, wie unsere bisherige Betrachtung gezeigt hat, besteht der Unterschied allein darin, daß die pflanzlichen Eiweißverbindungen der Chlorophyllkörper sich die Fähigkeit aus der Urzeit her erhalten haben, anorganisches Material zu assimilieren, während die Tiere fertiges organisches Nahrungsmaterial zum Aufbau ihrer lebendigen Substanz brauchen. Dagegen finden sowohl im Tier, wie im Pflanzenkörper Synthesen und Spaltungen statt. Der Synthese der Stärke in der Pflanze muß erst die Spaltung der Kohlensäure vorhergehen; damit die Stärke weiter verarbeitet werden kann, muß sie erst wieder in einfache Zuckerarten gespalten werden, usf. Schließlich haben wir auch in der Pflanze die ganze Reihe von Spaltungen, die mit dem Zerfall der spezifischen Eiweißverbindungen der Zelle, mit der Dissimilation verbunden sind, genau so wie im Tierkörper. Demgegenüber aber finden auch im Tierkörper in großem Umfange Synthesen statt. Die Weiterverarbeitung der verdauten Eiweißkörper, Fette und Kohlehydrate zum Aufbau der lebendigen Substanz erfordert ausgedehnte synthetische Prozesse und schließlich haben wir gesehen, daß die meisten Stoffe der regressiven Eiweißmetamorphose erst auf synthetischem Wege aus den Spaltungsprodukten der Eiweißkörper gebildet werden. Spaltungen und Synthesen gehen also in der tierischen wie in der pflanzlichen Zelle stets Hand in Hand, und die alte Unterscheidung in Spaltungs- und synthetische Organismen ist nur der Ausdruck eines früheren Standes unserer Kenntnisse von den chemischen Vorgängen in der lebendigen Substanz.
C. Die Abgabe von Stoffen.
In dem Maße, wie die lebendige Substanz Stoffe von außen aufnimmt, und in ihrem Stoffwechsel umsetzt, findet naturgemäß auch eine Ausscheidung der Umsetzungsprodukte statt, und ebenso mannigfaltig wie die Natur der von den verschiedenen Zellformen aufgenommenen Stoffe ist auch die der abgegebenen im speziellen Fall. Allein bei unserer geringen Kenntnis der Umsetzungen in der lebendigen Substanz können wir unter der erdrückenden Fülle aller von den verschiedenen Zellformen ausgeschiedenen Stoffe nur in den allerwenigsten Fällen sagen, aus welchen Prozessen sie herrühren. Bei der größten Masse wissen wir nicht einmal, ob sie aus den assimilatorischen Prozessen oder aus den dissimilatorischen Vorgängen stammen, denn offenbar werden sowohl bei dem aufbauenden Teile der Stoffwechselkette, als auch bei den Abbauprozessen eine große Menge von Nebenprodukten gebildet, sei es durch einfache Spaltung, sei es durch Synthese aus den dabei auftretenden Spaltungsprodukten oder anderen Stoffen, die vom Organismus entweder zu irgendeinem weiteren Nutzen oder als unbrauchbare Produkte nach außen ausgeschieden werden. Der letztere Gesichtspunkt, ob die ausgeschiedenen Stoffe noch weiter irgendeinen Nutzen für das Leben des Organismus haben, oder ob sie als unbrauchbare Produkte, als Schlacken, entfernt werden, hat zu einer Unterscheidung der abgegebenen Stoffe Anlaß gegeben, die, wenn sie sich auch in aller Schärfe nur schwer durchführen läßt, doch bei der ungeheuren Fülle der verschiedenen Produkte ein praktisches Einteilungsprinzip liefert. Man scheidet die von der Zelle abgegebenen Stoffe, unter denen sich gasförmige, flüssige und feste in allen Konsistenzgraden befinden, in Sekrete, wenn sie im Leben des Organismus noch weiter irgendeine nützliche Rolle spielen, und in Exkrete, wenn sie nur als unbrauchbare Reste nach außen entfernt werden. Danach spricht man auch von einer Sekretion im Gegensatz zur Exkretion. Gehen wir noch einen Augenblick auf beide Gruppen von Stoffen und auf den Modus ihrer Ausscheidung etwas näher ein.
1. Der Modus der Stoffabgabe von seiten der Zelle.
Wie der Modus der Nahrungsaufnahme, so gestaltet sich auch die Art und Weise der Abgabe von Stoffen verschieden, je nachdem die Stoffe gasförmig, gelöst oder geformt sind.
Die Abgabe der gasförmigen oder gelösten Stoffe erfolgt, das liegt auf der Hand, unter denselben Bedingungen und in derselben Weise wie die Aufnahme solcher Stoffe, denn hier haben wir denselben Vorgang, nur in umgekehrtem Sinne. In manchen Zellen, z. B. in vielen einzelligen Organismen, besorgt höchstwahrscheinlich die sogenannte kontraktile Vakuole (Fig. 69, ferner Fig. 30 b1 und b2 p. 95), ein Flüssigkeitstropfen, der im Zellkörper durch meist rhythmische Kontraktionen seines Wandprotoplasmas abwechselnd ausgeleert und wieder vollgesogen wird, die Ausscheidung der gelösten Stoffe. Dieselben sammeln sich vermutlich mit dem Wasser, das bei der Diastole der Vakuole von allen Seiten aus dem Protoplasma zusammenströmt, in der Vakuole und werden mit demselben bei der Systole der Vakuole nach außen abgegeben.
Jede Zelle scheidet vor allem, das ist klar, die Stoffe aus, die aus ihrem eigenen Stoffwechsel stammen. Indessen im zusammengesetzten Zellenstaat, besonders des tierischen Organismus, existieren auch Zellen, die daneben noch die Ausscheidung gewisser anderer Stoffe für den ganzen Körper übernommen haben. So scheiden die Nierenzellen in den gewundenen Harnkanälchen den von den Leberzellen bereiteten und an das Blut abgegebenen Harnstoff aus, indem sie ihn aus dem Blute aufnehmen und nach außen wieder abgeben. Andere Zellen der Niere, die Zellen in den sogenannten Glomerulis, jenen mikroskopischen Kapseln, in denen sich die feinen Arterien zu Knäueln verzweigen, saugen dagegen wieder gierig Wasser aus dem Blute auf, um es in das Nierenbecken als Harnwasser abzusondern. So sondern ferner die Lungenepithelzellen die im Körper von allen Gewebezellen gebildete Kohlensäure aus dem Blute ab usf.
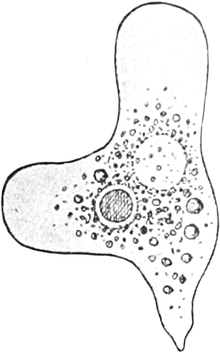
Fig. 69.
Amoeba
. Neben dem dunklen Kern liegt im Endoplasma eine blasse, kontraktile Vakuole.
Bei der Abgabe von geformten Stoffen haben wir wieder zwei Typen zu unterscheiden. Sie gestaltet sich nämlich wesentlich verschieden, je nachdem die ausgeschiedenen Stoffe entweder in der Zelle selbst in gelöstem Zustande sich befinden und erst nach der Ausscheidung fest werden, oder in der lebendigen Substanz schon als geformte Massen liegen, die als solche nach außen abgegeben werden.
Im ersteren Falle, der realisiert ist z. B. bei der Ausscheidung der meisten Skelettsubstanzen, wie Chondrin, Chitin, Kalk etc., haben wir dieselben Verhältnisse, wie bei der Ausscheidung gelöster Stoffe überhaupt; nur daß hier die Stoffe nach Austritt aus der lebendigen Substanz früher oder später feste Form annehmen. Durch das Festwerden der Stoffe an der Oberfläche wird aber nicht verhindert, daß immer wieder neue Stoffe in gelöstem Zustande an die Oberfläche gelangen und dort in festen Zustand übergehen, bis derart alle Stoffe an der Oberfläche ausgeschieden und fest geworden sind. So entstehen die Zellmembranen der Gewebezellen, die Zellulosehüllen der Pflanzenzellen, die Chitinpanzer der Insekten, die Kalkschalen der Foraminiferen etc. Diese skelettbildenden Sekrete nehmen beim Festwerden zum Teil ganz außerordentlich feine und komplizierte Strukturen an, um deren Analyse sich in der letzten Zeit durch eingehende Arbeiten namentlich BIEDERMANN[146] bemüht hat, dem es gelang, manche dieser Gebilde auch künstlich bis zu einem bestimmten Grade nachzuahmen.
Fig. 70.
Zellwand einer Markzelle von Clematis
mit Dickenwachstumsschichten. Nach S
TRASBURGER
.
Wir können uns diesen Modus und zugleich den Modus des Wachstums dieser Oberflächengebilde bis zu einem gewissen Grade durch einen Versuch veranschaulichen, der von TRAUBE angegeben und seinerzeit viel besprochen wurde. Läßt man vorsichtig einen Tropfen von gelatinierender Leimlösung in eine Gerbstofflösung fallen, so entsteht um den Tropfen herum eine sogenannte Niederschlagsmembran aus gerbsaurem Leim, indem an der Grenzschicht des Leims und der Gerbstofflösung beide Stoffe untereinander eine chemische Verbindung eingehen. Diese Niederschlagsmembran zeigt nun die eigentümliche Tatsache eines Wachstums sowohl in bezug auf ihre Fläche, als in bezug auf ihre Dicke. Man hat den TRAUBEschen Leimtropfen in der Gerbstofflösung geradezu mit einer lebendigen Zelle verglichen und als „künstliche Zelle“ bezeichnet. Da nämlich die Leimlösung Wasser an sich zieht, so tritt immer mehr Gerbstofflösung durch die Niederschlagsmembran hindurch zum Tropfen. Der Gerbstoff selbst kommt dabei immer nur bis an die Oberfläche des Tropfens, da er hier durch den Leim immer gleich gebunden wird, wobei er zur Verdickung der Membran durch fortwährende Anlagerung neuer Schichten führt. Das Wasser dagegen dringt in das Innere des Tropfens, so daß dieser immer mehr und mehr aufquillt und an Größe zunimmt. Dadurch entstehen fortdauernd in der Niederschlagsmembran äußerst feine Lücken und Risse, die aber schon im Moment ihres Entstehens durch neuen Niederschlag wieder geschlossen werden. So wächst die „künstliche Zelle“ kontinuierlich und gleichmäßig weiter, bis aller Leim gebunden ist. Die Bildung und Größenzunahme der Membran, die hier am großen Tropfen verhältnismäßig schnell vor sich geht, verläuft in der kleinen lebendigen Zelle sehr allmählich.
Man hat in der Botanik lange einen recht unfruchtbaren Streit geführt, ob die Zellulosemembran der Pflanzenzelle durch „Intussuszeption“, d. h. durch Zwischenlagerung neuer Teilchen zwischen die alten oder durch „Apposition“, d. h. durch äußere Anlagerung geschieht[147], ein Streit, der im Anschluß an die unglückliche Vergleichung oder vielmehr Unterscheidung NAEGELIs zwischen dem Wachstum der Kristalle und dem der Organismen entstanden ist, bis man in neuerer Zeit mehr und mehr zu der Ansicht gekommen ist, daß beide Formen zum Wachstum der Zellmembran führen, die eine zum Flächen-, die andere zum Dickenwachstum. Wenn der Protoplasmakörper der Zelle selbst sich vergrößert, wird die Membran gedehnt. Dabei entstehen zwar in der Regel keine wirklichen Risse, wie in der künstlichen Zelle, wohl aber werden infolge der Dehnung die Zwischenräume zwischen den einzelnen Teilchen der Membran weiter und größer, so daß neue Teilchen vom Protoplasma her dazwischentreten können. Andererseits aber zeigt die bei starken Vergrößerungen sichtbare Schichtung der Zellmembran parallel der Fläche, die mit zunehmendem Dickenwachstum immer deutlicher wird, daß auch eine Dickenzunahme durch Apposition vorhanden ist (Fig. 70).
Wenn die Zellen in ihrem Stoffwechsel kontinuierlich Stoffe produzieren und nach außen abscheiden, so entstehen allmählich jene gewaltigen konsistenten Massen, die bei mehrzelligen Geweben, wo die Produkte der einzelnen Zellen untereinander verschmelzen, wie z. B. beim Knorpel und Knochen (Fig. 71 und 72), die sogenannten Interzellularsubstanzen bilden. Nicht immer aber werden die Stoffe sogleich nach außen abgeschieden, in manchen Fällen werden sie in einer Vakuole in der Zelle selbst erst als eine feste Masse abgelagert, an die sich Teilchen für Teilchen, wie bei einem Kristall, weiter ansetzt. So werden z. B. die Stärkekörner in den Pflanzenzellen, ferner die Kalknadeln und Kieselkörper bei den Echinodermen, Schwämmen etc., in der Zelle selbst angelegt, und erst nachdem sie eine bestimmte Größe erlangt haben, werden sie nach dem Ausscheidungsmodus der festen, geformten Körper nach außen abgegeben (Fig. 73, nach SEMON)[148].
Fig. 71.
Fig. 72.
Fig. 71.Knochenquerschliff. Zwischen den sternförmigen Knochenzellen liegt die kompakte Knochengrundsubstanz. In der Mitte des Schliffs ist der Querschnitt eines Knochenkanälchens. Nach HATSCHEK.
Fig. 72. Hyaliner Knorpel. Zwischen den einzelnen Zellen ist eine feste hyaline Grundsubstanz ausgeschieden. Nach HATSCHEK.
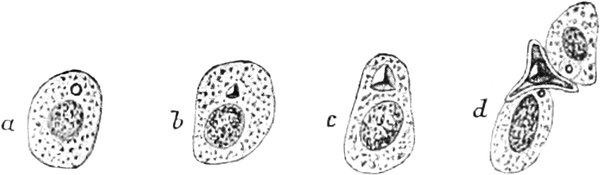
Fig. 73.
Entstehung eines Kalkdreistrahlers in einer Echinodermenzelle
. Nach S
EMON
.
Den Ausscheidungsmodus derjenigen Stoffe, die schon als geformte Massen im Zellinnern liegen, zeigen uns wieder am besten die Amöben. Wir sahen bei der Nahrungsaufnahme von seiten der Amöben, daß schließlich der Nahrungsballen, in einer Nahrungsvakuole eingeschlossen im Protoplasma liegt. In dieser Vakuole, die man auch als Verdauungsvakuole bezeichnen kann, wird alles Verdauliche gelöst und geht in das Protoplasma selbst über; die unverdaulichen Reste aber, wie Schalen von Algen, Panzer von Diatomeen, Chitinmassen von Rädertierchen etc., bleiben in der Vakuole liegen und werden schließlich auf folgende Weise ausgeschieden: Beim Kriechen der Amöbe kommt es gelegentlich vor, daß im strömenden Protoplasma die Verdauungsvakuole sehr nahe an die Oberfläche gelangt, so daß der Inhalt der Vakuole nur noch durch eine dünne Protoplasmawand von dem Medium getrennt ist. In diesem Falle zerreißt die schmale Wand sehr leicht, indem das Protoplasma nach beiden Seiten von der dünnsten Stelle fortfließt, und der Inhalt der Vakuole entleert sich mitsamt der geformten Masse nach außen (Fig. 74). Dieser Modus der Entleerung geformter Bestandteile aus dem Protoplasma findet sich ausschließlich bei Zellen, die keine Membran besitzen, also hauptsächlich bei den amöboiden Zellen der verschiedensten Art. Bei den Infusorien ist häufig an einer bestimmten Stelle des Körpers ein besonderer Zellafter vorhanden, ebenso wie diese Organismen auch einen dauernd bestehenden Zellmund haben (vergl. Fig. 25 b, p. 90, und Fig. 30 e, p. 95).
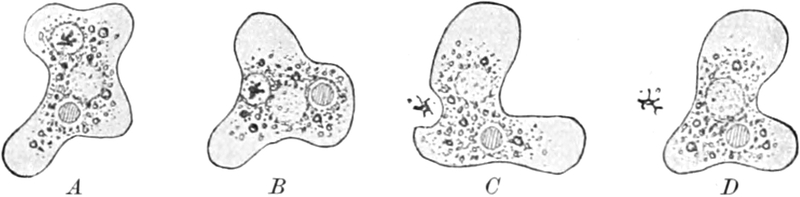
Fig. 74.
Amöbe in vier aufeinanderfolgenden Stadien der Exkretion eines unverdauten Nahrungsrestes
.
Eine Uebergangsform aber zwischen dem Modus der Abgabe flüssiger Stoffe und fester Stoffe stellt gewissermaßen die Schleimsekretion vor. Die Schleimzellen, die im zusammengesetzten Organismus eine so überaus wichtige Rolle spielen, indem sie gewisse innere Gewebeflächen durch ihre Schleimabsonderung schützen und glatt und feucht erhalten, sind stets zylindrisch. Ihr Kern, von etwas konsistenterem Protoplasma umgeben, liegt am Grunde des Zellkörpers, während der obere Teil der Zelle, der an die freie Schleimhautfläche grenzt, von einer Substanz, dem Mucigen, gebildet wird, die an der Oberfläche in stetiger Umbildung in Mucin begriffen ist. Bei ruhiger Tätigkeit der Zelle teilt sich kontinuierlich ein wenig von dem Sekret der dünnen Flüssigkeitsschicht mit, welche die Gewebefläche bedeckt. Bei energischer, plötzlicher Sekretion aber wird der ganze Ballen von Schleimsekret, welcher den oberen Teil der Zelle bildet, herausgeschoben (Fig. 75) und verschmilzt mit den von den benachbarten Schleimzellen ausgestoßenen Schleimpfropfen zu einer dicken zusammenhängenden Schleimdecke. Ganz merkwürdig ist die Eigentümlichkeit mancher Holothurien, jener gurkenförmigen Echinodermenformen, ihre dicke und feste Lederhaut auf Reize hin in kurzer Zeit zu einem seidenglänzenden, fadenziehenden Schleim umzuwandeln. Ueberhaupt verspricht die zellularphysiologische Untersuchung des Sekretionsvorgangs noch manche allgemein-physiologisch sehr interessante Tatsache zu liefern.
Fig. 75.
Schleimzellen
.
A
drei isolierte Schleimzellen.
B
sieben zusammenhängende Schleimzellen, von denen die drei linken voll, die vier rechten entleert sind. Nach S
CHIEFFERDECKER
.
2. Sekret- und Exkretstoffe.
Da es weder möglich noch notwendig ist, hier auf die ganze Fülle der Sekrete und Exkrete, die Tier- und Pflanzenzellen in ihrem Stoffwechsel liefern, näher einzugehen, so wollen wir uns auf einen Ueberblick über die wichtigsten dieser Stoffe beschränken.
a) Sekrete.
Wenn wir das Charakteristische der Sekrete darin erblicken, daß sie dem Organismus von irgendwelchem Nutzen sind, so ist die Tatsache verständlich, daß manche dieser Sekrete dem Organismus dauernd erhalten bleiben und nicht an die Außenwelt abgegeben werden. Danach können wir zwei Gruppen von Sekreten unterscheiden, je nachdem sie nach ihrer Entstehung immer sofort nach außen abgegeben oder dauernd im Organismus, sei es in der Zelle, sei es an ihrer Oberfläche, zurückgehalten werden, wobei es im Zellenstaat des zusammengesetzten Organismus übrigens in beiden Fällen durchaus nicht immer nötig ist, daß das Sekret gerade derjenigen Zelle Nutzen bringt, von der es sezerniert wird.
Unter den Sekreten, die nach ihrer Produktion den Organismus verlassen, haben wir in erster Linie die, welche zur extrazellulären Verdauung in Beziehung stehen, also die Enzyme oder gelösten Fermente, die im Tierreich sowohl wie im Pflanzenreich auftreten. So produzieren die Zellen der Speicheldrüsen bei den Tieren das Ptyalin, das die Stärke in Traubenzucker überführt, die Zellen der Magendrüsen das Pepsin, das die Eiweißkörper peptonisiert, sowie das vielleicht mit dem Pepsin identische Labferment oder Chymosin, das die Kaseingerinnung herbeiführt, die Zellen des Pankreas oder der Bauchspeicheldrüse das Ptyalin zur Verdauung der Stärke, das Trypsin zur Peptonisierung der Eiweißkörper und das Steapsin oder die Lipase zur Spaltung der Fette. Bei den Pflanzen finden wir ebenfalls Enzyme, so z. B. bei den sogenannten „fleischfressenden Pflanzen“, die, wie unsere auf Sümpfen wachsende Drosera, Insekten fangen, festhalten und durch Sekretion peptonisierender Enzyme verdauen. Von großer Bedeutung sind schließlich die Enzyme bei den einzelligen Organismen für die Ernährung der Zelle, wenn diese Organismen, wie die Bakterien, auf organische Nahrung angewiesen sind, und ihre festen Nahrungsstoffe erst verflüssigen müssen, um sie resorbieren zu können.
Als eine höchst bedeutungsvolle, aber ihrer chemischen Natur nach noch völlig unbekannte Gruppe von Sekreten kann die bisher nur aus ihren Wirkungen bekannte Reihe der „Antitoxine“ betrachtet werden. Es handelt sich hier um Stoffe, die bei Einführung bestimmter Gifte, vor allem der durch pathogene Bakterien erzeugten organischen Gifte, von den Zellen des Körpers produziert werden und die ungemein wichtige Wirkung haben, daß sie als Gegengifte den Körper vor den betreffenden Giftwirkungen schützen. Es ist genugsam bekannt, daß man auch künstlich durch Einspritzung von sterilisiertem Blutserum solcher Tiere, in denen man durch eine Infektion die Bildung der entsprechenden Antitoxinart in großem Maßstabe hervorgerufen hat, ein anderes Tier oder den Menschen gegen die betreffende Infektionskrankheit immunisieren resp. bei ihm den Ablauf der schon eingetretenen Infektionskrankheit sistieren oder wenigstens mildern kann. Es sei hier nur auf die grundlegenden Erfahrungen hingewiesen, die wir den genialen Untersuchungen EHRLICHs und seiner Schüler, sowie ROBERT KOCHs, PASTEURs, ROUXs, BEHRINGs und vieler anderer verdanken[149].
Andere Sekrete, wie das weit verbreitete Mucin und die mucinoiden Substanzen, aus denen der Schleim besteht, haben mehrfache Bedeutung. Der Schleim z. B. schützt einerseits die Zelle selbst vor äußeren Einwirkungen, die etwa schädlich sein können, z. B. vor direkten Berührungen, indem bei einer starken Reizung die Schleimzelle eine dicke Schleimschicht produziert, die sie von dem berührenden Körper trennt, wie das der Fall ist bei den Schleimzellen der Luftröhre, wenn ein Fremdkörper in die „unrechte Kehle“ gekommen ist. Ferner dient der Schleim dazu, die zerkauten Bissen gleitbar zu machen, so daß z. B. die vom Schleim des Mundspeichels durchtränkten Speiseballen besser durch die enge Speiseröhre gleiten können. Schließlich aber dient der Schleim besonders bei den niederen Tieren und bei den einzelligen Organismen zum Festhaften. Die Rhizopoden sondern an der Oberfläche ihres Protoplasmakörpers einen feinen, schleimigen Ueberzug ab, mit dem sie sich einerseits an ihrer Unterlage ankleben, was für ihre Lokomotion unentbehrlich ist, mit dem sie aber andererseits auch anschwimmende Nahrungsorganismen festhalten, so daß sie dieselben in ihren Protoplasmakörper hineinziehen und verdauen können. Eine ähnliche Bedeutung, wie der Schleim als Schutzmittel, haben die Fette, die, wie der Talg, von den Talgdrüsen der Haut produziert werden und die Haut einerseits vor zu starker Verdunstung schützen und anderseits geschmeidig erhalten.
Als Schutzmittel allein dienen ferner, wie STAHL[150] durch eine Reihe von interessanten Versuchen gezeigt hat, auch in anderer Weise viele Sekrete im Tierreich, vor allem aber im Pflanzenreich, wenn sie übelriechende oder übelschmeckende Stoffe, und zwar Säuren und ätherische Oele, enthalten. Die Organismen werden dadurch geschützt vor dem Gefressenwerden. Gerade in diesen Fällen liegen meist sehr interessante Anpassungen an bestimmte Verhältnisse vor, die durch natürliche Selektion entstanden sind und für den Organismus überaus zweckmäßige Einrichtungen repräsentieren. Dasselbe gilt auch von anderen Fällen, in denen die Pflanzen gerade durch gutriechende oder gutschmeckende Sekrete, wie ätherische Oele, Blütenhonig etc., Insekten anlocken, deren Kommen und Gehen den Pflanzen insofern von Nutzen, ja vielfach unentbehrlich ist, als diese Tiere den Blütenstaub an ihren Beinen mit forttragen und zu den weiblichen Blüten verschleppen, die auf diesem Wege befruchtet werden. Derartige oft erstaunlich zweckmäßige Anpassungen finden sich zahllose besonders im Pflanzenreich, und die Physiologie der Sekretion berührt sich hier in engster Weise mit dem interessanten Gebiete der Wechselbeziehungen zwischen Pflanzen und Tieren.