Fünftes Kapitel. Von den Reizen und ihren Wirkungen.
Reading edition
I. Das Wesen der Reizung.
A. Das Verhältnis der Reize zu den Lebensbedingungen.
1. Der Begriff des Reizes.
2. Die Reizqualitäten.
3. Die Reizintensität.
4. Die sogenannten „trophischen“ Reize.
B. Die Reizbarkeit der lebendigen Substanz.
1. Der Begriff der Reizbarkeit und die Art der Reizwirkungen.
2. Die Dauer der Reizwirkungen.
3. Die Fortleitung des Reizerfolges.
II. Die Reizwirkungen an der Zelle.
A. Die Wirkungen der verschiedenen Reizqualitäten.
1. Die Wirkungen chemischer Reize.
a) Erregungswirkungen.
b) Lähmungswirkungen.
2. Die Wirkungen osmotischer Reize.
a) Erregungswirkungen.
b) Lähmungswirkungen.
3. Die Wirkungen mechanischer Reize.
a) Erregungswirkungen.
b) Lähmungswirkungen.
4. Die Wirkungen thermischer Reize.
a) Erregungswirkungen.
b) Lähmungswirkungen.
5. Die Wirkungen strahlender Reize.
a) Erregungswirkungen.
b) Lähmungswirkungen.
Die Wirkungen der RÖNTGEN-Strahlen.
Die Wirkungen der BECQUEREL-Strahlen.
5. Die Wirkungen elektrischer Reize.
a) Erregungswirkungen.
b) Lähmungswirkungen.
B. Die bewegungsrichtenden Wirkungen einseitiger Reizung.
1. Chemotaxis.
2. Barotaxis.
3. Phototaxis.
4. Thermotaxis.
5. Galvanotaxis.
C. Die Wirkungen der Ueberreizung.
1. Ermüdung und Erschöpfung.
2. Das Refraktärstadium.
3. Die scheinbare Erregbarkeitssteigerung durch Reize.
4. Tod durch Ueberreizung.
D. Die spezifische Energie der lebendigen Substanz.
Wenn der Physiker einen Naturvorgang analysieren will, dann begnügt er sich nicht damit, die Bedingungen festzustellen, unter denen er eintritt, sondern er sucht auch zu erfahren, wie sich der Vorgang gestaltet, wenn er die Bedingungen verändert. Erst dann kennt er ganz die Gesetzmäßigkeit des Vorganges.
Das Leben ist ein Naturvorgang. Wir haben die Lebensäußerungen kennen gelernt, wir haben auch die Bedingungen festgestellt, unter denen sie eintreten, und wir haben die Folgen der gänzlichen Entziehung dieser Bedingungen gesehen. Was uns übrig bleibt, das ist: zu erfahren, wie sich die Lebensäußerungen verhalten, wenn wir die Lebensbedingungen nicht entziehen, sondern nur quantitativ verändern, und wenn wir außer den allgemeinen Lebensbedingungen andere, qualitativ neue Bedingungen auf die lebendige Substanz einwirken lassen. Man hat die Lebensäußerungen, wie sie eintreten, wenn alle äußeren Lebensbedingungen dauernd und unverändert erfüllt bleiben, als spontane Lebensäußerungen bezeichnet und ihnen die Veränderungen, die eintreten, wenn andere Einflüsse auf sie einwirken, als Reizwirkungen gegenübergestellt. Wir können diese Unterscheidung beibehalten, allein wir müssen uns doch bewußt bleiben, daß die Spontaneität keine unbedingte ist, daß in Wirklichkeit die spontanen Lebensäußerungen nicht minder auf einer Wechselwirkung der lebendigen Substanz mit der Außenwelt beruhen, als die Reizwirkungen. Die spontanen Lebensäußerungen repräsentieren nur die Reaktion der lebendigen Substanz auf die normalen äußeren Lebensbedingungen, die Reizwirkungen dagegen die Reaktion der lebendigen Substanz auf die veränderten äußeren Lebensbedingungen. Aber es ist in vielen Fällen überhaupt nicht möglich, zu entscheiden, ob ein Vorgang eine spontane Lebensäußerung oder eine Reizwirkung in diesem Sinne ist, weil eben auch in der Natur die äußeren Bedingungen eines Organismus nicht kontinuierlich gleich bleiben, sondern sich häufig in einer Weise verändern, die sich selbst unseren feinsten Untersuchungsmethoden entzieht. Um daher die Reizwirkungen in unzweifelhafter Form studieren zu können, wählen wir den Weg des Experiments und erzeugen sie künstlich, indem wir Reize auf die lebendige Substanz einwirken lassen können, die wir willkürlich nach methodischen Gesichtspunkten bestimmen. Dagegen gewinnen wir den unschätzbaren Vorteil, daß wir die Bedingungen, unter denen die Reizwirkungen eintreten, selbst in der Hand haben und genau kontrollieren, so daß wir mit den Lebensvorgängen wie mit jedem einfachen physikalischen Vorgang experimentieren können.
I. Das Wesen der Reizung.
Die allgemeine Definition des Reizbegriffs ergibt sich aus dem Gesagten ohne weiteres: Jede Veränderung der äußeren Bedingungen, die das Leben eines Organismus bestimmen, kann als Reiz betrachtet werden. Trifft der Reiz auf einen Organismus, der die innere Bedingung der Reizbarkeit besitzt, d. h. die Fähigkeit, auf Reize zu reagieren, so haben wir den Vorgang der Reizung in seiner Vollständigkeit. Allein es ist doch nötig, die allgemeinen Eigentümlichkeiten des Reizungsvorganges im einzelnen noch etwas näher ins Auge zu fassen.
A. Das Verhältnis der Reize zu den Lebensbedingungen.
1. Der Begriff des Reizes.
Merkwürdigerweise ist der Begriff des Reizes früher niemals klar definiert worden, obwohl die Physiologie auf Schritt und Tritt Reizwirkungen an den lebendigen Organismen studiert und obwohl sie den Reiz selbst fortwährend methodisch als Hilfsmittel zum Studium der Lebensvorgänge verwendet. Es ist daher unbedingt nötig, den Begriff des Reizes in einer klaren und scharfen Weise zu fixieren und zwar so, daß diese Formulierung allgemein alle Reize umfaßt.
Wenn wir den Reiz definieren als eine Veränderung in den äußeren Lebensbedingungen eines Organismus, so ist diese Definition zweifellos allgemein zutreffend, aber es fragt sich, ob sie auch zureichend ist. Man könnte vielleicht daran zweifeln. Betrachten wir nämlich folgenden Fall.
Eine Amoeba limax befinde sich in ihrer natürlichen Nährflüssigkeit, also etwa in einem Heuaufguß, in dem diese Amöbenform sich in enormen Mengen entwickelt. Nunmehr fügen wir dem Tropfen, in dem wir die Amöben beobachten, eine sehr verdünnte Lösung von Kalilauge hinzu, so bemerken wir die bereits oben (p. 220) beschriebenen Vorgänge. Die Veränderung in der Zusammensetzung des Mediums wirkt als Reiz. Infolgedessen zieht sich die Amöbe zunächst kugelig zusammen und beginnt dann von neuem Pseudopodien auszustrecken, die aber nun eine andere Form haben als vorher. Die Amöbe nimmt die Form der Amoeba radiosa an und bleibt dauernd in dieser Form, solange die jetzige Zusammensetzung des Mediums bestehen bleibt. Bis hierher ist der ganze Vorgang klar. Der Zusatz von Kalilauge zum Medium bedeutete eine Veränderung in den äußeren Lebensbedingungen, wirkte also als Reiz. Die Amöbe hat mit der Veränderung der Lebensbedingungen ihre Form verändert. Die Radiosaform ist diejenige Form, die den neuen Lebensbedingungen entspricht. Sie ist der Ausdruck der jetzt bestehenden Summe von Bedingungen und sie bleibt bestehen, solange diese Bedingungen bestehen bleiben. Für die Amoeba radiosa also war die Zufügung von Kalilauge ein Reiz, für die Amoeba limax dagegen ist sie eine Lebensbedingung. Nehmen wir nämlich die Amöbe vorsichtig mit einem feinen Kapillarröhrchen unter dem Mikroskop aus dem alkalischen Tropfen heraus und versetzen wir sie wieder in einen Tropfen ihrer ursprünglichen Nährflüssigkeit, so sehen wir, wie sie ihre Pseudopodien wiederum kontrahiert und wie sie allmählich wieder die Form der Amoeba limax annimmt. In diesem Falle hat also die Entziehung der Kalilauge auf Amoeba limax als Reiz gewirkt. Einen analogen Fall liefert das oben p. 220 angeführte Beispiel des Branchipus stagnalis und der Artemia salina und zahllose andere Beispiele für die gleichen Verhältnisse ließen sich anführen.
Was alle diese Fälle lehren, ist folgendes. Nicht irgendeine Veränderung in den äußeren Lebensbedingungen eines Organismus an sich, d. h. absolut betrachtet, repräsentiert einen Reiz, denn die Kalilauge, die anfangs als Reiz wirkte, ist in dem angegebenen Beispiel sehr bald zu einer Lebensbedingung geworden; sondern nur eine Veränderung der äußeren Lebensbedingungen in Relation auf den gegebenen Zustand des Organismus bedeutet einen Reiz. Die allgemeine Definition des Reizbegriffs, wie sie oben gegeben wurde, enthält aber bei genauerer Betrachtung diese Relation bereits in sich, denn durch die bestehenden Lebensbedingungen ist vom Standpunkte des konsequenten Konditionismus der gegebene Zustand des Organismus als solcher eindeutig bestimmt und demgemäß muß auch jede Veränderung in den Lebensbedingungen den gegebenen Zustand verändern und wieder einen anderen Zustand bedingen. Es ist daher logisch völlig überflüssig, diese Relation auf den gegebenen Zustand des Organismus noch einmal besonders in der Definition zum Ausdruck zu bringen, denn dann wäre dieses bestimmende Moment doppelt vorhanden. Es liegt aber schon in dem Begriff der Lebensbedingung, die immer nur einen einzigen Zustand eindeutig bestimmt. Wir können daher sowohl ganz allgemein zutreffend als auch völlig zureichend den Begriff des Reizes definieren, indem wir sagen: Reiz ist jede Veränderung in den äußeren Lebensbedingungen.
2. Die Reizqualitäten.
Wenn jede Veränderung der Faktoren, die von außen her auf den Organismus einwirken, als Reiz wirken kann, dann liegt es auf der Hand, daß der Arten von Reizen unzählige existieren. Nicht nur jede einzelne äußere Lebensbedingung kann sich ändern; auch neue, vorher nicht bestehende Bedingungen können hinzutreten und auf den Organismus wirken. Dennoch läßt sich die Fülle der verschiedenen Reize wenigen größeren Gruppen von Reizqualitäten unterordnen. Eine natürliche Einteilung der Reize ergibt sich dabei am besten von der energetischen Seite der Betrachtung aus, denn mit jeder äußeren Einwirkung auf einen Körper ist ja ein Energiewechsel verbunden. Wir können daher die Reize nach der Form der Energie gruppieren, durch die sie mit dem Organismus in Beziehung treten.
Als chemische Reize können wir nach diesem Prinzip alle Einwirkungen chemischer Natur zusammenfassen, also vor allem die Veränderungen in der Zufuhr von Nahrung, Wasser, Sauerstoff, aber auch alle Einwirkungen von anderen chemischen Veränderungen, die sonst nicht mit den Organismen in Berührung kommen. Zu den chemischen Reizen haben wir auch die Reize zu zählen, durch welche im tierischen Zellenstaat das Nervensystem auf die von ihm abhängigen Gewebezellen einwirkt, denn jede Nervenreizung hat ein chemisches Geschehen in der Nervensubstanz zur Folge, das sich fortpflanzt bis zur peripherischen Gewebezelle, das also für die peripherische Gewebezelle als chemischer Reiz betrachtet werden kann.
Als osmotische Reize können wir alle Veränderungen im osmotischen Druck des umgebenden Mediums der lebendigen Substanz bezeichnen, denn alle diese Veränderungen werden auf den Wassergehalt der lebendigen Substanz verändernd einwirken und so zu Veränderungen im Ablauf der Lebensvorgänge führen. Leider hat man bisher die rein osmotischen Reizwirkungen von den rein chemischen Reizwirkungen noch kaum zu differenzieren vermocht.
Als mechanische Reize können wir dann alle rein mechanischen Einwirkungen auf den Organismus bezeichnen, sei es, daß sie sich wie Stoß, Erschütterung, Druck, Zug, Tonschwingungen als Veränderungen der gröberen Druckverhältnisse geltend machen, sei es, daß sie sich in molekularen Attraktionen, also in Kohäsions- oder Adhäsionswirkungen des umgebenden Mediums äußern, sei es schließlich, daß sie auf Wirkungen der Gravitationsenergie beruhen.
Als thermische Reize haben wir die Veränderungen der Temperatur, unter der sich der Organismus befindet, zu verzeichnen.
Als strahlende Reize gesellen sich dazu die Veränderungen in der Einwirkung der Lichtstrahlen, denen wir auch der Einfachheit halber die anderen Strahlenarten beizählen können, die in neuerer Zeit bekannt geworden sind.
Als elektrische Reize schließlich würden wir die Einwirkung von Elektrizität auf den lebendigen Organismus zu bezeichnen haben.
Damit sind aber diejenigen Energieformen, die überhaupt in Beziehung mit dem Organismus treten, erschöpft. Wir sehen, es fehlt in dieser Aufzählung der Reizqualitäten noch der Magnetismus. Allein der Magnetismus ist eine Energieform, die, wie wir jetzt mit voller Sicherheit sagen können, überhaupt keine Wirkung auf die lebendige Substanz äußert, und die wir füglich nicht als Reiz bezeichnen dürfen. Es gab eine Zeit, in der man dem Magnetismus den weitgehendsten und wunderbarsten Einfluß auf den lebendigen Organismus zuschrieb; das war die Zeit, als der Arzt MESMER den sogenannten „tierischen Magnetismus“ populär machte, und als man Menschen, Tiere und Pflanzen mit Magneten „magnetisieren“ zu können glaubte. Indessen, die neuere Forschung, und zwar zuerst die Entdeckungen des schottischen Arztes JAMES BRAID[347], haben gezeigt, daß die Tatsachen, die man dabei in den Fällen, in denen nicht ein bloßer Betrug vorlag, in der Tat beobachtet hatte, Wirkungen der Hypnose waren, Tatsachen, die mit dem Magnetismus nicht das geringste zu tun hatten, für deren Zustandekommen ein Stück Glas, ein blanker Knopf, eine Gasflamme und jeder andere in die Augen fallende Gegenstand dieselbe Bedeutung hat wie ein Magnet. Dennoch hat es bei dem geheimnisvollen Reiz, den alles Mystische auf das menschliche Gemüt auszuüben pflegt, auch in unserer Zeit nicht bloß unter den phantasievollen Anhängern des Spiritismus, sondern sogar unter ausgezeichneten Aerzten Männer gegeben, die sich von der Wirkung starker Magnete auf gewisse Menschen, vor allem auf hysterische Frauen, überzeugt zu haben glaubten. Aber allen diesen Beobachtungen hat die nüchterne Forschung, sobald sie sich damit beschäftigte, immer den Schleier des Geheimnisvollen entrissen und sie entweder als Betrug von seiten der „Medien“ oder als Selbsttäuschung der Beobachter erkannt. In der Tat, so oft man in einwandsfreier Weise Versuche über die Einwirkung von Magneten auf den lebendigen Organismus anstellte, ebenso oft haben diese immer mit durchaus negativem Erfolge geendigt. Selbst die ausgedehnten Versuche, die vor einiger Zeit von PETERSON und KANNELLY in Amerika mit den allerstärksten Elektromagneten angestellt wurden, haben nur die völlige Wirkungslosigkeit des Magnetismus auf die lebendige Substanz zu konstatieren vermocht.
Als die einzigen Reizqualitäten können daher nur die chemischen, mechanischen, thermischen, photischen und elektrischen Veränderungen in der Umgebung eines Organismus gelten, und diesen wenigen Gruppen lassen sich in der Tat alle einzelnen Reize unterordnen.
3. Die Reizintensität.
Um die Vorstellung von dem Verhältnis der Reize zu den Lebensbedingungen noch klarer zu gestalten, müssen wir, nachdem wir die Reizqualitäten kennen gelernt haben, nunmehr den Verhältnissen der Reizintensität unsere Aufmerksamkeit zuwenden.
Eine jede äußere Lebensbedingung kann in verschiedenem Grade erfüllt sein: Die Zufuhr von Nahrung, Wasser etc. kann eine sehr geringe, aber auch eine sehr große, die Temperatur eine sehr niedrige, aber auch eine sehr hohe sein, kurz, jede Lebensbedingung kann graduell zwischen sehr weiten Grenzen schwanken, ohne daß das Leben dadurch gefährdet wird. Dennoch sind solche Grenzen von den meisten Lebensbedingungen bekannt, eine obere und eine untere, die wir als Maximum und Minimum bezeichnen. Nur zwischen diesen beiden Grenzwerten jeder Lebensbedingung ist das Leben dauernd möglich. Werden sie überschritten, dann entwickelt sich der Tod. Aber nicht alle Punkte zwischen den beiden Grenzwerten sind in gleichem Maße günstig für den Ablauf des Lebensvorganges. Die Intensität des Lebensvorganges ist eine geringere, wenn die Lebensbedingung Werte vorstellt, die nahe dem Maximum oder dem Minimum liegen, als wenn sie einen mittleren Wert besitzt. Denjenigen Wertgrad einer jeden Lebensbedingung, bei dem die Intensität des Lebensvorganges dauernd am größten ist, bezeichnen wir als Optimum. Das Optimum liegt aber durchaus nicht immer in der Mitte zwischen Minimum und Maximum, in vielen Fällen näher dem Maximum, in anderen Fällen näher dem Minimum.
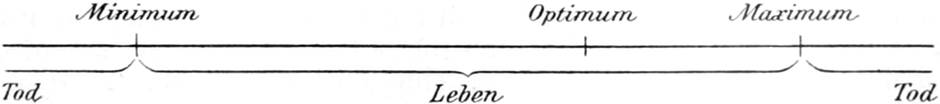
Nach diesem Schema der Lebensbedingungen läßt sich ohne weiteres der Begriff des Reizes veranschaulichen. Stellen wir uns vor, ein Organismus befände sich im Optimum irgendeiner Lebensbedingung, etwa der Temperatur, so wirkt jede Schwankung der Temperatur, sei es nach der Richtung des Maximums, sei es nach der Richtung des Minimums hin, als Reiz. Derjenige Wert jeder Lebensbedingung, an den der Organismus angepaßt ist, stellt sein Optimum vor, er bezeichnet den Indifferenzpunkt der Reizung; hier ist der Reiz gleich Null. Aendern sich die Werte der Lebensbedingung nach dem Maximum oder Minimum zu, so wächst damit auch die Intensität des Reizes, bis sie das Maximum oder Minimum erreicht. Die Intensität des Reizes hat also ein Minimum, das mit dem Optimum der betreffenden Lebensbedingung zusammenfällt, und zwei Maxima, das eine beim Minimum, das andere beim Maximum der betreffenden Lebensbedingung. Bei übermaximaler Reizung entwickelt sich der Tod. Wenn wir daher das Schema für die Reizung entwerfen, so müssen wir dieselben Punkte verzeichnen, wie auf dem Schema für die Lebensbedingungen, nur daß wir hier den Punkten andere Namen geben, denn das Optimum wird für den Reiz zum Nullpunkt, das Minimum und Maximum werden beide zu Maxima. Jede Intensitätsschwankung zwischen dem Nullpunkt und den beiden Maxima wirkt als Reiz.
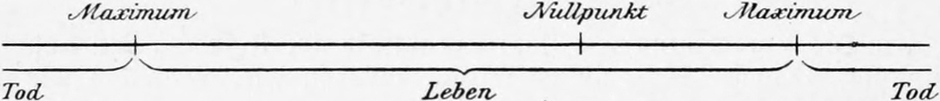
Dieses Schema umfaßt alle Reizqualitäten, auch diejenigen, die, wie gewisse chemische und die elektrischen Reize, unter normalen Verhältnissen überhaupt nicht mit dem Organismus in Beziehung treten. Die letzteren Reizqualitäten sind nur Faktoren, die unter den Lebensbedingungen in keinem Intensitätsgrade vertreten sind, deren vollständiges Fehlen also dem Optimum entspricht. Sie können daher nur ein Maximum haben, so daß für sie nur der rechte Teil des Schemas in Betracht kommt. Auch in der allgemeinen Definition des Reizes, die als Reiz jede Veränderung der äußeren Faktoren bezeichnet, welche auf einen Organismus einwirken, sind diese Reizqualitäten mit einbegriffen, denn diese Definition gilt ebensowohl für die Faktoren, die, wie z. B. die Wärme, in einem bestimmten Intensitätsgrade selbst als Lebensbedingungen fungieren, als auch für diejenigen Faktoren, die, wie z. B. die Elektrizität, unter gewöhnlichen Verhältnissen gar nicht in der Umgebung des Organismus vorhanden sind, also überhaupt nicht als Lebensbedingungen existieren.
Bei unserer Betrachtung der Reizintensität bedarf noch ein Punkt der Erwähnung. Stellen wir uns vor, ein Organismus, etwa ein Skelettmuskel, befände sich unter Bedingungen, unter denen kein Reiz ihn berührt, und wir ließen nun, von der Intensität 0 an aufwärts steigend, einen Reiz, der sich, wie etwa der galvanische Strom, bequem und fein in seiner Intensität abstufen läßt, auf ihn einwirken. Dann sollten wir erwarten, daß, sobald wir die Intensität über 0 gesteigert haben, der Muskel Reizwirkungen zeigt, d. h. eine Zuckung ausführt. Das ist aber nicht der Fall. Wir können die Intensität des Reizes vom Nullpunkt an noch beträchtlich steigern, ehe der Muskel auch nur die geringste Zuckung ausführt. Erst wenn die Intensität des Reizes eine bestimmte Höhe erreicht hat, sehen wir, daß der Muskel mit einer Zuckung auf den Reiz antwortet, und von hier an bleibt die Zuckung niemals aus, sondern wird bis zu einem bestimmten Grade nur noch energischer, je weiter wir die Intensitätssteigerung treiben. Der Reiz ruft also erst von einer bestimmten Intensität an eine sichtbare Reaktion hervor, und diesen Punkt bezeichnen wir als „Reizschwelle“. Unterhalb der Schwelle entzieht sich die Wirkung des Reizes der Wahrnehmung, denn wir müssen selbstverständlich annehmen, daß auch unterhalb der Reizschwelle der Reiz eine, wenn auch nicht wahrnehmbare, so doch zweifellos vorhandene Wirkung ausübt. Anderseits aber steigert sich oberhalb der Schwelle auch die Reizwirkung mit zunehmender Intensität, bis sie ihre maximale Höhe erreicht hat. Für die verschiedenen Formen der lebendigen Substanz ist der Schwellenwert eines Reizes sehr verschieden. So werden z. B. Nervenfasern schon durch äußerst schwache galvanische Reize in Tätigkeit gesetzt, während Amöben sehr starke galvanische Ströme verlangen, ehe sie eine Reaktion zeigen. Und das gleiche gilt von allen anderen Reizqualitäten gegenüber den verschiedenen Formen der lebendigen Substanz.
4. Die sogenannten „trophischen“ Reize.
Unserer bisherigen Betrachtung lag der Uebersichtlichkeit wegen immer die Vorstellung zugrunde, daß ein gewisser Gegensatz zwischen Lebensbedingung und Reiz existiere, insofern die Lebensbedingung einen stabilen, gegebenen Zustand repräsentiere und der Reiz jede Veränderung dieses Zustandes. Allein diese scharfe Unterscheidung läßt sich nicht durchweg aufrecht erhalten, und zwar aus dem Grunde, weil in Wirklichkeit die Lebensbedingungen durchaus nicht vollkommen stabile und kontinuierlich wirkende Faktoren sind, sondern in der Natur fortwährend Schwankungen erfahren. Daher können gewisse Lebensbedingungen unter Umständen auch als Reize betrachtet werden oder, was dasselbe ist, gewisse Reize als Lebensbedingungen fungieren. Ein paar konkrete Fälle werden dieses Verhältnis ohne weiteres klar machen.
Die Nahrung steht allen denjenigen Organismen, die sich nicht in einem dauernd gleichbleibenden Nährmedium befinden, sondern sich vielmehr ihre Nahrung selbst suchen müssen, nur in unregelmäßigen Zwischenräumen zur Verfügung. Es wechseln Perioden des Nahrungsbedürfnisses und des Nahrungsüberflusses miteinander ab. Hat ein solcher Organismus längere Zeit keine Nahrung bekommen, hat z. B. eine Amöbe, die sich von Algen nährt, längere Zeit ihre Nahrung entbehrt, und kommt sie nun zufällig wieder an eine Stelle, wo sich Algen befinden, so wirken diese Nahrungsorganismen als Reiz auf die Amöbe und veranlassen sie, heranzukriechen und zu fressen. Hier wirkt die Nahrung als Reiz, obwohl sie doch eine allgemeine Lebensbedingung ist. Analoge Fälle haben wir im Zellenstaat. Das einfachste Beispiel bieten die grünen Pflanzen. Eine ihrer wichtigsten Lebensbedingungen bildet das Licht. Ohne Licht findet keine Spaltung der Kohlensäure, keine Stärkebildung, keine Assimilation in den grünen Teilen der Pflanze statt; die Pflanze geht zugrunde. Dennoch ist diese Lebensbedingung den weitgehendsten Intensitätsschwankungen unterworfen, denn Licht wechselt fortwährend mit Dunkelheit, wirkt also als Reiz. In der Tat können wir nicht nur den Assimilationsprozeß als Reizwirkung auffassen, sondern der Lichtreiz erzeugt daneben noch eine Reihe anderer, ganz augenfälliger Reizwirkungen, die sich in Bewegungsvorgängen äußern. Auch im tierischen Zellenstaat sind solche Fälle, in denen Reize geradezu Lebensbedingungen sind, in großer Zahl bekannt. Hier werden den Gewebezellen die Reizimpulse, die im Zentralnervensystem erzeugt werden, übermittelt durch die Nervenfasern. Ein Muskel z. B. bewegt sich nur, wenn ihm ein Reiz vom Gehirn oder Rückenmark her durch seinen Nerven zugeleitet wird. Schneiden wir aber den dazu gehörigen Nerven durch, oder machen wir ihn sonst auf irgendeine Weise unfähig, die Reizimpulse vom Zentralnervensystem her auf den Muskel zu übertragen, dann finden wir, daß der Muskel, der sich nicht mehr bewegen kann, nach einiger Zeit atrophiert. Ja, in geringerem Grade sehen wir schon einen Muskel schwächer werden und an Masse abnehmen, wenn wir ihn wenig gebrauchen, d. h. wenn wir ihm vom Zentralnervensystem wenig Reizimpulse zusenden. Man spricht dann von einer „Inaktivitätsatrophie“. Und das gilt nicht bloß von den Muskelzellen, sondern von allen Geweben, denen durch ihre Nerven keine Reizimpulse mehr zugeleitet werden. In Fällen, in denen durch irgendeine Krankheit eine Nervenstrecke für die Reizleitung vorübergehend unwegsam geworden ist, sucht daher die ärztliche Behandlung erfolgreich die Atrophie der dazu gehörigen Gewebe zu verhindern, indem sie dieselben durch elektrische Ströme künstlich zu reizen sich bemüht, und gerade in dieser Wirkung des galvanischen Stromes dürfte überhaupt die einzige therapeutische Bedeutung der Elektrizität liegen. Auch der umgekehrte Vorgang, die Erstarkung eines Organs durch Uebung, gehört in die Reihe dieser Tatsachen. Durch fortgesetzte Uebung kann man einen Muskel von mittlerer Stärke, wie jeder Turner, Fechter, Ruderer, Bergsteiger weiß, in kurzer Zeit in ein Organ von ganz bedeutender Stärke und Ausdauer verwandeln, dessen Masse mit der Uebung ganz beträchtlich zunimmt. Die Wirkung aller Uebung beruht ebenfalls nur darauf, daß dem betreffenden Organe fortwährend Reizimpulse zugeführt werden, die es in Tätigkeit versetzen.
Aus allen diesen Beispielen geht mit Deutlichkeit hervor, daß gewisse Reize gleichzeitig sehr wichtige Lebensbedingungen sein können, und diese Reize, die zur dauernden Erhaltung des Lebens notwendig sind, ohne welche die Ernährung, der Stoffwechsel der betreffenden Organe nicht dauernd ungestört bestehen kann, mag man mit einem leider oft sehr verkehrt angewendeten Namen als trophische Reize bezeichnen.
Die trophischen Reize stehen aber nicht etwa in einem Gegensatz zu den anderen Reizen, sondern der Begriff des trophischen Reizes bezeichnet lediglich die besondere Eigentümlichkeit der Wirkung irgendeines Reizes, durch häufige Wiederkehr eine Massenzunahme des von ihm betroffenen Organs oder Gewebes herbeizuführen. Die verschiedenartigsten Reize aber können eine solche trophische Wirkung haben.
Man hat im Hinblick auf die trophischen Reize, die durch die Nerven im tierischen Organismus den Geweben übermittelt werden, geglaubt, besondere trophische Nervenfasern und Nervenzentra neben den Nervenfasern und Zentren von bekannter Wirkung annehmen zu müssen, Nervenfasern, die gar nichts mit der eigentümlichen Funktion der betreffenden Gewebe, die sie versorgen, zu tun haben, sondern lediglich ihre Ernährung und ihren Stoffwechsel regulieren sollten. Dieser Gedanke der sogenannten trophischen Nerven hat viel Unheil und Verwirrung in der Physiologie und in der Medizin angerichtet und noch in neuerer Zeit manchen Forscher zu den abenteuerlichsten Vorstellungen und vermeintlichen Entdeckungen verleitet. Und dennoch ist für jeden kritischen Forscher, der eine bestimmte Anschauung mit den Begriffen zu verbinden gewöhnt ist, mit denen er umgeht, die unklare Idee der trophischen Nerven nichts anderes als ein Stück des alten Mystizismus der Vitalisten. Wir sehen denn auch, daß es durchaus nicht der Annahme besonderer trophischer Nerven und eigener trophischer Reize, die neben den anderen Nerven und anderen Reizen existieren, bedarf, um die Tatsachen zu erklären, sondern daß die Nerven, welche die charakteristische Funktion eines jeden Gewebes beeinflussen, eben dadurch den Stoffwechsel der betreffenden Zellen regulieren[348], mit anderen Worten, daß jeder Nerv für das Gewebe, das er versorgt, als trophischer Nerv dient, indem die Impulse, die er vermittelt, eben für das Gewebe eine Lebensbedingung vorstellen.
B. Die Reizbarkeit der lebendigen Substanz.
1. Der Begriff der Reizbarkeit und die Art der Reizwirkungen.
Jeder Reizungsvorgang erfordert zwei Faktoren: einerseits einen Reiz, anderseits einen Körper, der reizbar ist. Treten beide Faktoren in Beziehung miteinander, so resultiert daraus eine Reizwirkung, ein Reizerfolg, eine Reaktion. Die Reize haben wir soeben genauer kennen gelernt, beschäftigen wir uns nunmehr mit der Reizbarkeit.
Wenn wir den Begriff der Reizbarkeit (Erregbarkeit, Irritabilität) in einer allgemein gültigen Form definieren wollen, können wir nur sagen: Die Reizbarkeit der lebendigen Substanz ist ihre Fähigkeit, auf Veränderungen in ihrer Umgebung mit einer Veränderung ihres stofflichen und dynamischen Gleichgewichts zu reagieren. Alle anderen Momente, die man noch in die Definition aufnehmen wollte, würden nur auf spezielle Fälle Anwendung finden. Dennoch hat man vielfach, mehr oder weniger unbewußt, den Begriff, ohne ihn fest zu definieren, mit einzelnen Spezialfällen verknüpft. Indem man z. B. besonders das Verhältnis der Größe des Reizes zur Größe des Reizerfolges ins Auge faßte, hat man als Typus der Reizwirkung allein diejenigen Fälle angesehen, in denen durch die verschwindend geringe Energiemenge, die als Reiz auf irgendeine Form der lebendigen Substanz einwirkt, die Produktion einer enormen Menge von Energie als Reizwirkung hervorgerufen wird, und hat demgemäß in einseitiger Auffassung als Reizbarkeit der lebendigen Substanz die Fähigkeit betrachtet, auf geringe Reize mit einer unverhältnismäßig großen Energieentfaltung zu antworten. In der Tat ist dieser Fall, wenn er auch nur ein spezielleres Verhalten repräsentiert, doch besonders augenfällig und weit verbreitet, so daß es sich lohnt, auf das Energiegetriebe dabei etwas näher einzugehen.
Nehmen wir als reizbaren Körper einen Muskel mit seinem Nerven und als Reiz den mechanischen Reiz des Druckes, dann können wir folgende Anordnung treffen. Wir hängen den Wadenmuskel (Musculus gastrocnemius) eines möglichst großen Wasserfrosches, dessen Nerven (Nervus ischiadicus) wir freipräpariert haben, senkrecht an einem Muskelhalter auf, indem wir den Oberschenkelknochen, an dem der Muskel mit seinem oberen Ende entspringt, in einer Klemme befestigen. Das untere Ende des Muskels ist mit der Achillessehne vom Knochen abgeschnitten und in der Sehne selbst mit einem Schlitz versehen worden, in dem ein Haken befestigt ist. Dieser Haken trägt ein Gewicht von 100 g. Der Nerv des Muskelpräparats liegt auf einer horizontalen Platte, die an einem Stativ befestigt ist. Jede Reizung des Nerven veranlaßt eine Zuckung des Muskels. Lassen wir jetzt aus der Höhe von etwa 1 cm ein Gewicht von 10 g mit einer scharfen Kante quer auf den Nerven herabfallen, so daß der Nerv durch den Druck mechanisch gereizt wird, so entsteht im Moment der Reizung eine Zuckung des Muskels, und der Muskel hebt das Gewicht von 100 g etwa um 1 cm in die Höhe. Hier ist also die Energiemenge, die der Arbeit des Muskels entspricht, etwa zehnmal größer als die Energiemenge, die als Reiz auf den Muskel eingewirkt hat, ja das Mißverhältnis läßt sich unter günstigen Bedingungen sogar noch weit größer gestalten. Nach dem Gesetz von der Erhaltung der Energie ist es klar, daß die beträchtliche Energiemenge, die bei der Reaktion nach außen frei wird, nicht aus der Umwandlung der geringen Energiemenge stammen kann, die im Reize dem Organismus zugeführt worden ist. Sie muß also aus dem Organismus selbst herrühren und muß schon vorher als potentielle Energie im Organismus aufgespeichert gewesen sein. Wir haben uns daher vorzustellen, daß die Reizbarkeit in diesem Falle darauf beruht, daß große Mengen potentieller Energie in der lebendigen Substanz des Muskels angesammelt sind, so daß es nur der Zufuhr einer kleinen Energiemenge bedarf, um sie in aktuelle Energie zu verwandeln. Eine derartige Reizbarkeit und Reizwirkung ist aber durchaus nicht auf die lebendige Substanz beschränkt. An leblosen Körpern können wir analoge Verhältnisse herstellen. Wenn wir eine starke Feder spannen und durch einen dünnen Faden, der eben der Spannkraft das Gleichgewicht hält, zusammenbinden, so stellt die Feder ein System vor, in dem eine große Menge potentieller Energie aufgespeichert ist, obwohl es sich vollkommen in Ruhe befindet. Berühren wir aber jetzt mit der Schneide eines scharfen Messers nur ganz leise den Faden, der die Feder zusammenhält, so schnellt die Feder mit großer Gewalt auseinander und leistet nach außen bedeutende Arbeit. Die potentielle Energie der Feder ist durch den schwachen Reiz, den das Zertrennen des Fadens repräsentiert, in aktuelle Energie verwandelt worden; das Zertrennen des Fadens hat, wie man sagt, die Federkraft „ausgelöst“. Um eine solche „Auslösung“ handelt es sich auch bei den explosiblen Körpern, und da wir hier eine Auslösung chemischer Spannkraft vor uns haben, ist die Aehnlichkeit mit den Auslösungsvorgängen der lebendigen Substanz noch größer, denn auch in letzterer ist die potentielle Energie nur in Form chemischer Spannkraft aufgespeichert. In einer erbsengroßen Menge von Nitroglyzerin ist eine solche Menge potentieller Energie enthalten, daß es nur eines schwachen Stoßes bedarf, um eine wahrhaft zerschmetternde Wirkung auszulösen. Ebenso wie das Nitroglyzerinmolekül ist auch die lebendige Substanz explosibel, wenn auch in einer Weise, die nicht so vernichtende Wirkungen hervorruft.
Allein die Auslösungsvorgänge sind, wie gesagt, nur spezielle Fälle der Reizwirkungen, und das Verhältnis zwischen Reiz und Reizerfolg kann in anderen Fällen ein durchaus anderes sein, denn es gibt einerseits Reize, die, wie etwa Herabsetzung der Temperatur, Entziehung von Nahrung, Abschluß von Sauerstoff etc., überhaupt nicht in der Einwirkung, sondern vielmehr in der Entziehung einer größeren Energiemenge bestehen, und es existieren anderseits Reizwirkungen, die gar nicht in einer Erhöhung, sondern vielmehr in einer Herabsetzung, ja in einer vollständigen Unterdrückung aller Energieproduktion zum Ausdruck kommen, wie etwa die Wirkungen der Narcotica. Demnach müssen wir es sogar als ein Charakteristikum des Reizvorganges betrachten, daß zwischen Reiz und Reizwirkung überhaupt kein bestimmtes Verhältnis bezüglich der Energiegrößen besteht, das Anspruch auf allgemeine Gültigkeit machen könnte. Wir können daher, wenn wir den Begriff der Reizbarkeit allgemein gültig fassen wollen, nur die obige Definition aufstellen. Dann können wir bezüglich der Reizwirkungen zunächst nur sagen: Die allgemeine Wirkung aller Reize auf die lebendige Substanz besteht in einer Veränderung der spontanen Lebensäußerungen.
Bei der ungeheuren Mannigfaltigkeit der Lebensäußerungen je nach der Zusammensetzung der lebendigen Substanz und bei der großen Fülle verschiedener Reize ist es daher von vornherein begreiflich, daß die Reizwirkungen im einzelnen überaus mannigfaltig sein müssen. Dazu kommt, um die Mannigfaltigkeit der Reizwirkungen noch zu vermehren, daß nicht nur die verschiedenen Reizqualitäten, sondern auch die verschiedene Intensität, sowie der zeitliche Verlauf und der örtliche Umfang einer Reizung unter Umständen ganz verschiedene Wirkungen hervorrufen können. Diese große Mannigfaltigkeit der Reizwirkungen in Verbindung mit der Tatsache, daß die allgemeinen Reizwirkungen erst in letzter Zeit methodisch untersucht worden sind, macht es vorläufig noch sehr schwierig, allgemeine Gesetze für die Reizwirkungen aus den Tatsachen abzuleiten. Dennoch ist es möglich, für einzelne Gruppen von Reizwirkungen auch gemeinschaftliche Eigentümlichkeiten empirisch festzustellen.
Die Veränderungen, welche die spontanen Lebensäußerungen unter dem Einfluß von Reizen erfahren, sind verschiedener Art. Erstens können die spontanen Lebensäußerungen in ihrer Qualität unverändert bleiben und nur quantitative Veränderungen erfahren. Das kann sich entweder in einer Steigerung, sei es aller, sei es einzelner Lebensvorgänge äußern — dann bezeichnen wir die Reizwirkung als „Erregung“ — oder es kann in einer Herabsetzung aller oder einzelner Lebensvorgänge zum Ausdruck kommen —, dann sprechen wir von einer „Lähmung“.
Zweitens aber können die spontanen Lebensäußerungen auch in ihrer Art gänzlich verändert werden, so daß völlig neue Lebensäußerungen auftreten, die sonst im Leben der Zelle gar nicht vorkommen. Eine solche Reizwirkung haben wir z. B. vor uns in den metamorphotischen Veränderungen des Stoffwechsels bei den nekrobiotischen Prozessen[349], wo unter mancherlei, zum Teil noch gar nicht bekannten Einwirkungen die Zellen des Körpers Stoffe aufhäufen, die bei ihnen im ungestörten Leben niemals beobachtet werden. Allein diese Reizwirkungen sind noch recht wenig untersucht, und soweit man bis jetzt urteilen kann, scheint es, als ob sie nur sekundäre Folgen der quantitativen Veränderungen von normalen Lebensvorgängen sind. So kann man sich z. B. vorstellen, daß bei den metamorphotischen Prozessen die Anhäufung bestimmter Substanzen in der Zelle darauf beruht, daß ein oder mehrere Glieder der normalen Stoffwechselkette infolge von chronischer Reizung allmählich gelähmt oder ganz ausgefallen sind, so daß Verbindungen, die sich auch normalerweise bilden, die aber wegen sofortiger weiterer Umsetzung nicht zur Anhäufung kommen, nunmehr in größerer Menge sich aufspeichern, weil die Stoffwechselglieder, die zu ihrer Umsetzung nötig sind, jetzt nicht mehr existieren. Indessen, das kann vorläufig nur Vermutung bleiben. Unsere Betrachtung wird sich daher hauptsächlich mit den Erregungs- und Lähmungsvorgängen zu beschäftigen haben. Es ist jedoch nicht überflüssig, unsere Begriffsbestimmungen von Reiz, Erregung und Lähmung, sowie das Verhältnis dieser Dinge zueinander vorher noch einmal scharf zu betonen, da in der Physiologie nicht selten durch die meist stillschweigend angenommene falsche Vorstellung, daß ein Reiz stets Erregung erzeugen müsse, eine große Verwirrung und Schwierigkeit in der Beurteilung der Tatsachen entstanden ist. Das können wir vermeiden, wenn wir folgende Definitionen fest im Auge behalten:
Reiz ist jede Veränderung in den äußeren Lebensbedingungen eines Organismus.
Erregung ist jede Steigerung, sei es einzelner, sei es aller Lebensvorgänge.
Lähmung ist jede Herabsetzung einzelner oder aller Lebensvorgänge.
Die Wirkung der Reize kann in Erregung oder in Lähmung bestehen.
2. Die Dauer der Reizwirkungen.
Eine andere Frage, die bisher freilich noch viel weniger eine systematische Behandlung erfahren hat, die Frage nach der Dauer der Reizwirkungen, verdient nicht minder Interesse, denn sie steht in engster Beziehung mit Problemen, die, wie z. B. die Tatsachen der Anpassung, der Immunisierung etc., zum Teil eine weitgehende praktische Bedeutung besitzen. Es ist zu erwarten, daß diese Verhältnisse, die für experimentelle, zellularphysiologische Untersuchungen ein sehr dankbares Objekt abgeben, bald mehr Aufmerksamkeit auf sich ziehen werden. Vorläufig sind es nur wenige zusammenhangslose Erfahrungen ganz allgemeiner Natur, die wir hier verzeichnen können.
Im allgemeinen können wir sagen, daß die Dauer der Reizwirkung in erster Linie von der Dauer und Intensität des Reizes abhängt, und daß die Reizwirkung nach dem Aufhören des Reizes um so schneller abklingt, je kürzer und schwächer der Reiz war, bis schließlich der ursprüngliche Zustand wiederhergestellt ist. Indessen verdienen doch einige spezielle Fälle noch besondere Beachtung.
Fassen wir zunächst die Verhältnisse bei andauernder Reizung ins Auge, so sehen wir hier, daß gewöhnlich die Reizwirkung während der Dauer des Reizes eine Aenderung erleidet, und zwar je nach der Intensität des Reizes. Bei schwachen Reizen finden wir nach einiger Zeit ein Nachlassen und schließlich ein Aufhören der im Beginn der Reizung beobachteten Reizwirkung; es ist eine Gewöhnung, eine Anpassung an den Reiz eingetreten. Beispiele dafür sind sehr leicht an den verschiedensten Objekten und bei Anwendung der verschiedenartigsten Reizqualitäten zu beobachten. So gelingt es z. B., wie ENGELMANN[350] und andere[351] gezeigt haben, mannigfache einzellige Organismen an verhältnismäßig starke Salzlösungen zu gewöhnen, die anfangs deutliche Reizwirkungen hervorrufen. Bringt man ein Actinosphaerium, das seine Pseudopodien sonnenstrahlenartig ausgestreckt hat, in eine schwache Lösung von Natriumbikarbonat, so zieht es allmählich alle Pseudopodien ringsherum ein und wird zur Kugel. Bald aber treten wieder feine Pseudopodienspitzen aus der Oberfläche hervor, die sich strecken und verlängern, bis das Actinosphaerium wieder seine frühere Gestalt angenommen hat und vollkommen normal geworden ist. Durch sukzessive Steigerung der Konzentration kann man denselben Erfolg mehrmals hintereinander erzielen. Auch an schwache Giftlösungen, an hohe Temperaturen, an intensives Licht etc. treten solche Anpassungen ein. Sind die Reize dagegen stark, so findet keine Anpassung statt, sondern es entwickelt sich der Symptomenkomplex der Ermüdung und Erschöpfung, den wir an anderer Stelle noch näher kennen lernen werden. Die Erregbarkeit nimmt mehr und mehr ab, und schließlich ist der Tod die Folge. Diesen Tatsachen der Anpassung einerseits und der Ermüdung anderseits stehen einige Fälle gegenüber, in denen bei andauernder Reizung auch die Reizwirkungen dauernd in gleicher Stärke bestehen bleiben. Beispiele davon liefern uns gewisse Muskeln des Säugetierkörpers, die sich in einem dauernden Erregungszustande befinden, die, wie man sagt, einen „Tonus“ besitzen. Es sind das besonders die Schließmuskeln der Harnblase und des Afters. Diese Muskeln befinden sich kontinuierlich in einem Zustande der Kontraktion, der veranlaßt wird durch Reize, die ununterbrochen von den Zellen des Nervensystems her auf sie einwirken. Auch von den Skelettmuskeln wissen wir, daß sie fast dauernd einen allerdings je nach der Körperlage und Haltung fortwährend an Intensität wechselnden Tonus besitzen, der unterhalten wird durch die ihnen auf dem Wege des Nervensystems übermittelten, meist von der Peripherie her kommenden schwachen Reize. So wirkt z. B. die Lage und Haltung des Körpers selbst als Reiz und bewirkt reflektorisch auf dem Wege des Nervensystems die Unterhaltung eines bestimmten Tonus gewisser Muskeln, wie das etwa beim Stehen des Menschen der Fall ist. Besonders augenfällig wird das aber, wenn man Tiere in eine abnorme Lage bringt und sie verhindert, wieder in ihre normale Körperlage zurückzukehren. In diesem Fall kann der sonst reflektorisch ablaufende Mechanismus der Lagekorrektion sich nicht abspielen. Infolgedessen wirkt der Reiz der abnormen Lage nun dauernd ein und die zur Lagekorrektion innervierten Muskeln werden daher in eine andauernde tonische Kontraktion versetzt. Das ist der Fall bei den fälschlich als tierische Hypnose bezeichneten Zuständen[352].
Ergreifen wir z. B. ein Meerschweinchen sicher, aber ohne es stark zu drücken, mit den Händen, drehen wir es plötzlich auf den Rücken und halten wir es in dieser Stellung mit sanftem Druck eine kurze Zeitlang fest, so macht es einige kurze Abwehrbewegungen und bleibt dann regungslos auf dem Rücken liegen. Dabei bemerken wir, daß die Muskeln der Extremitäten, die eben noch ihre abwehrenden Bewegungen ausführten, ziemlich stark kontrahiert sind, so daß die Extremitäten starr in die Luft ragen (Fig. 167). Dieser Zustand der tonischen Erregung kann, wenn das Tier nicht gestört wird, eine Viertelstunde andauern.
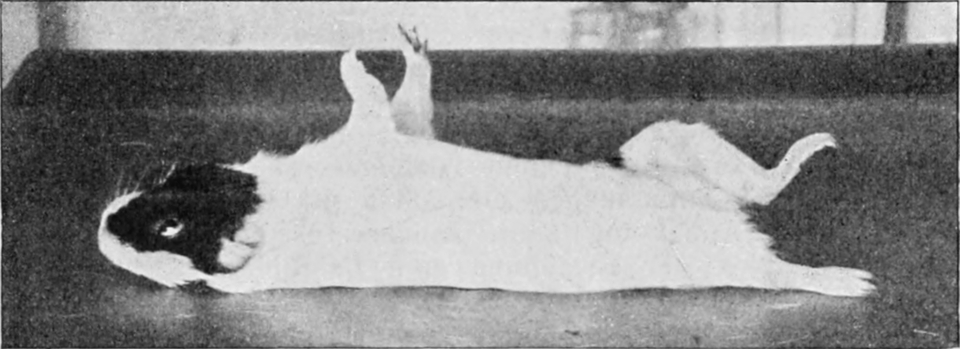
Fig. 167.
Meerschweinchen
, bewegungslos auf dem Rücken liegend, mit tonisch kontrahierten Extremitätenmuskeln. Die Beine ragen starr in die Luft.
Bei kurzer Reizung pflegen die Reizwirkungen nach dem Aufhören des Reizes meist ziemlich bald wieder dem normalen Zustande des Organismus Platz zu machen, doch gibt es einzelne Fälle, in denen das Erlöschen der Reizwirkung nicht unmittelbar beginnt, sondern in denen sich eine längere, unter Umständen eine sehr lange Nachwirkung des Reizes bemerkbar macht. So kommt es vor, daß ein einzelner, kurzdauernder Reiz gewisse Ganglienzellen und die von denselben innervierten Muskeln in eine langdauernde tonische Erregung versetzt.
Hierher gehört das Auftreten eines andauernden Reflextonus nach kurzdauernder Reizung bei großhirnlosen Fröschen. Wenn man einen großhirnlosen Frosch, der ruhig in seiner gewöhnlichen Hockstellung dasitzt (Fig. 168 A), sanft an beiden Seiten der Wirbelsäule zwischen zwei Fingern reibt, so erhebt er sich auf seine Extremitäten, indem er die Muskeln derselben kontrahiert, und bleibt in dieser grotesken Stellung unter Umständen länger als eine Stunde stehen (Fig. 168 B). Durch geeignete Operationen kann man feststellen, daß dabei durch den mechanischen Hautreiz die Ganglienzellen der Mittelhirnbasis in einen tonischen Erregungszustand geraten sind, der sich den sämtlichen Körpermuskeln, die von hier aus innerviert werden, mitteilt[353].
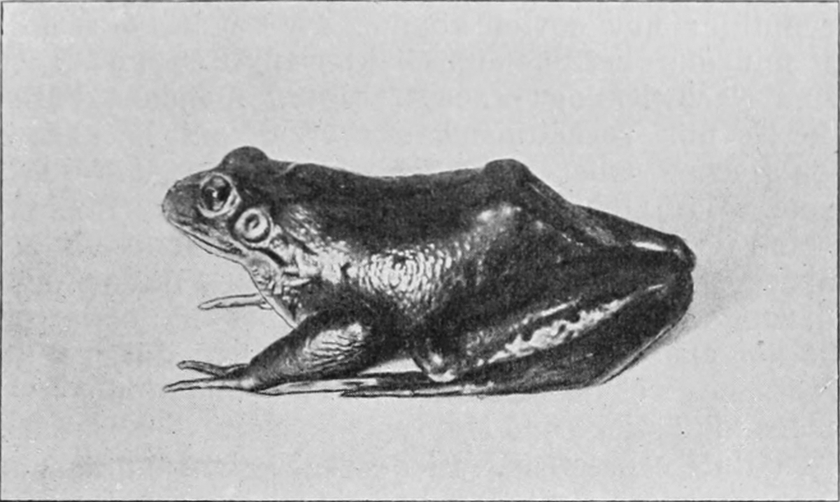
Fig. 168
A.
Großhirnloser Frosch
in gewöhnlicher Hockstellung.
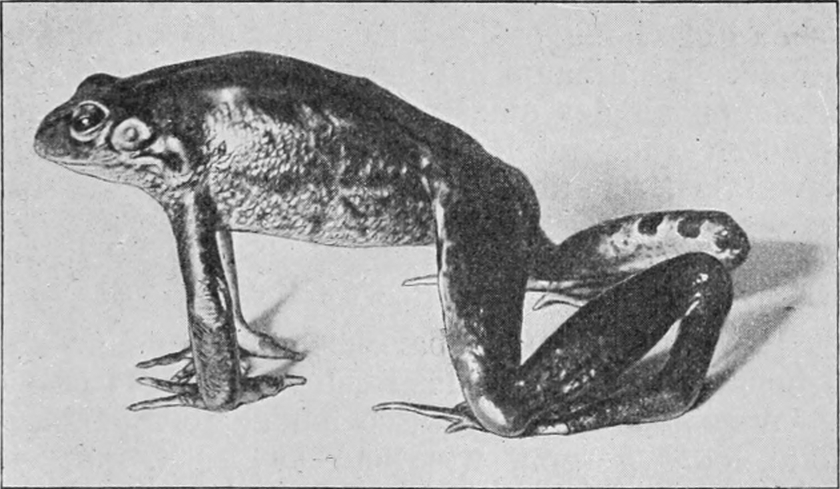
Fig. 168
B.
Großhirnloser Frosch
in der Stellung des allgemeinen Reflextonus. Die Extremitätenmuskeln und die Rückenmuskeln sind dauernd kontrahiert, so daß der Frosch auf erhobenen Beinen mit Katzenbuckelstellung unbeweglich stehen bleibt.
Am interessantesten und praktisch am wichtigsten aber sind die Nachwirkungen mancher chemischer Reize, vor allem der Bakteriengifte. Es ist eine alte Erfahrung, daß der Körper des Menschen und der Tiere nach dem Ueberstehen gewisser Infektionskrankheiten, wie Pocken, Scharlach, Masern etc., immun wird für eine weitere Infektion mit dem gleichen Krankheitserreger. Bekanntlich ist auf dieser Tatsache die moderne Therapie und Prophylaxe der Infektionskrankheiten begründet worden, insonderheit die Impf- und die Injektionsmethoden von JENNER, KOCH, PASTEUR, EHRLICH, BEHRING, ROUX und anderen. Durch künstliche Einführung des abgeschwächten Infektionsstoffes oder der Stoffwechselprodukte der betreffenden Krankheitserreger oder schließlich des Blutserums von Tieren, die der Infektion ausgesetzt worden waren, hat man willkürlich eine Immunität hervorzurufen gewußt. Was bei allen diesen rein empirisch gefundenen Behandlungsweisen im Körper vorgeht, entzieht sich freilich noch vollkommen unserer Kenntnis; nur soviel können wir sagen, daß die einmalige Vergiftung mit den betreffenden Bakteriengiften an den Zellen des Körpers eine Nachwirkung erzeugt, die in manchen Fällen, wie bei der Diphtherie, nur verhältnismäßig kurze Zeit, in anderen Fällen, wie bei den Pocken, aber viele Jahre und Jahrzehnte hindurch andauern kann. Man steht hier vor einer Tatsache, für die vorläufig nur durch eine Hypothese, nämlich durch die geniale und außerordentlich fruchtbare „Seitenkettentheorie“ EHRLICHs[354] der erste Versuch einer Erklärung angebahnt ist. Es ist aber zu erwarten, daß ihr Verständnis am meisten gefördert werden dürfte durch zellularphysiologische Versuche, welche die komplizierten und unübersehbaren Bedingungen des Säugetier- und Menschenkörpers vorerst durch die einfachsten Verhältnisse ersetzen. In der Tat haben einige Versuche mit verschiedenen chemischen Stoffen bei einzelligen Organismen gezeigt, daß hier analoge Ergebnisse zu erzielen sind. So hat z. B. DAVENPORT[355] Infusorien durch Gewöhnung an schwache Sublimatlösungen für einige Zeit immun gemacht gegen Lösungen von solcher Konzentration, die bei nicht immunisierten Individuen sofort tödlich wirkten. Der zellularphysiologischen Forschung eröffnet sich hier ein ungemein weites und fruchtbares Feld. Ueberhaupt hat gerade die methodische Erforschung der Reizwirkungen an der einzelnen Zelle nicht bloß in theoretischer Hinsicht, sondern auch im Hinblick auf die praktische Medizin eine ganz fundamentale Bedeutung[356].
3. Die Fortleitung des Reizerfolges.
Mit der Reizbarkeit untrennbar verknüpft ist eine andere Eigenschaft der lebendigen Substanz, das ist die Fortleitung des Reizerfolges. Wird nämlich eine Masse lebendiger Substanz an irgendeinem Punkte lokal gereizt, wie man das z. B. sehr einfach durch Berühren oder Stechen mit einer spitzen Nadel erreichen kann, dann bleibt die Reaktion nicht auf den gereizten Punkt beschränkt, sondern der Reizerfolg breitet sich von der Reizstelle mehr oder weniger weit auch über die benachbarten Teile aus.
Auch die Fähigkeit der Fortleitung des Reizerfolges ist aller lebendigen Substanz eigentümlich, nur in sehr verschiedenem Grade. Während die eine Form der lebendigen Substanz den Reizerfolg sehr schnell und sehr weit leitet, pflanzt ihn die andere Form sehr langsam und nur auf die allernächste Umgebung fort.
Am ausgeprägtesten ist diese Fähigkeit bei derjenigen Form der lebendigen Substanz entwickelt, die ausschließlich die Funktion der Erregungsleitung versieht: das ist bei der tierischen Nervenfaser. Die Nerven leiten einen Reizerfolg mit ungeheurer Geschwindigkeit auf meterweite Entfernung hin. HELMHOLTZ hat berechnet, daß im Nerven eines Frosches die Erregung mit einer Geschwindigkeit von 26 m in der Sekunde fortgeleitet wird. Beim Menschen ist die Geschwindigkeit noch größer, etwa 34 m in der Sekunde, beim Hummer dagegen, wie LÉON FREDERICQ und VAN DE VELDE gezeigt haben, geringer und beträgt etwa 6 m in der Sekunde.
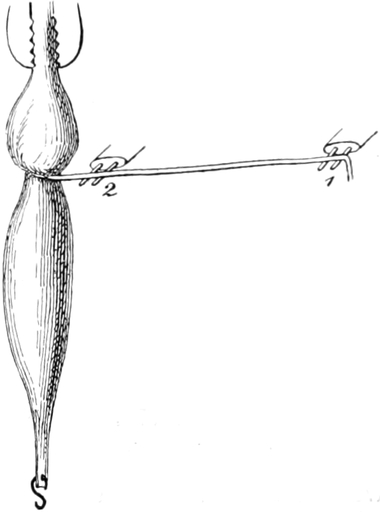
Fig. 169.
Musculus gastrocnemius mit Nervus ischiadicus vom Frosch
. Das Präparat ist am Oberschenkelknochen, an dem der Muskel ansetzt, in einen Muskelhalter eingespannt und der Nerv wird einmal bei
1
, das andere Mal bei
2
gereizt.
Man hat verschiedene Methoden ersonnen, um die Fortpflanzungsgeschwindigkeit der Erregung im Nerven zu ermitteln, ein Unternehmen, das bei der großen Schnelligkeit des Vorganges nicht leicht ist. Das Prinzip aller dieser Methoden beruht auf der Feststellung der Zeitdifferenz zwischen dem Eintritt einer Muskelzuckung, wenn der dazu gehörige Nerv sehr nahe dem Muskel gereizt wird, und dem Eintritt der Zuckung bei Reizung des Nerven an einer entfernteren Stelle (Fig. 169). Zu diesem Zwecke kann man das DU BOIS-REYMONDsche Federmyographion benutzen, einen Apparat, der zur graphischen Darstellung einer Muskelbewegung dient (Fig. 170). Der Apparat besteht aus einem Muskelhalter, in dem ein Wadenmuskel vom Frosch, dessen Nerv freipräpariert ist, mit dem Oberschenkelknochen so befestigt wird, daß er mit einem Hebel in Verbindung steht, der jede Zuckung des Muskels mitmacht und mittels einer feinen Spitze auf einer plötzlich vorbeigeschnellten berußten Glastafel verzeichnet. Die Glastafel gleitet in einem schlittenartigen Gestell in vertikaler Ebene vor dem Schreibhebel vorbei und wird durch eine Feder in Bewegung gesetzt. Gleichzeitig mit der Auslösung der Federkraft wird auch ein elektrischer Reiz auf den Muskelnerven ausgelöst und außerdem eine Stimmgabel zum Tönen gebracht, die ihre Schwingungen ebenfalls vermöge einer Schreibspitze auf der schwarzen Glastafel verzeichnet. Reizt man nun einmal den Nerven in einer Entfernung von etwa 3 cm vom Muskel und einmal unmittelbar in der Nähe des Muskels, so erfolgt die Zuckung das erste Mal um eine geringe Zeit später als das zweite Mal, weil die Erregung beim ersten Mal eine längere Strecke zu durchlaufen hat als beim zweiten Mal, ehe sie sich dem Muskel selbst mitteilen kann. Diese Differenz in der Zeit, die in beiden Fällen vergeht vom Moment der Reizung bis zum Eintreten der Zuckung, kann man auf der schwarzen Tafel, auf der sich die Zuckung in Form einer Kurve aufgezeichnet hat, außerordentlich genau messen an der Anzahl der Stimmgabelschwingungen, die sich gleichzeitig auf der Tafel verzeichnen (Fig. 171). Da nämlich die Schwingungszahl der Stimmgabel in einer Sekunde bekannt ist, kann man leicht die Dauer einer einzelnen Schwingung und aus der Anzahl der Schwingungen, die zwischen dem Eintritt der zweiten und der ersten Zuckung liegen, die Zeit berechnen, die vergeht, wenn die Erregung eine Nervenstrecke von 3 cm durchläuft. So findet man, daß die Erregungsleitungsgeschwindigkeit des Froschnerven unter normalen Bedingungen etwa 26 m in der Sekunde beträgt.
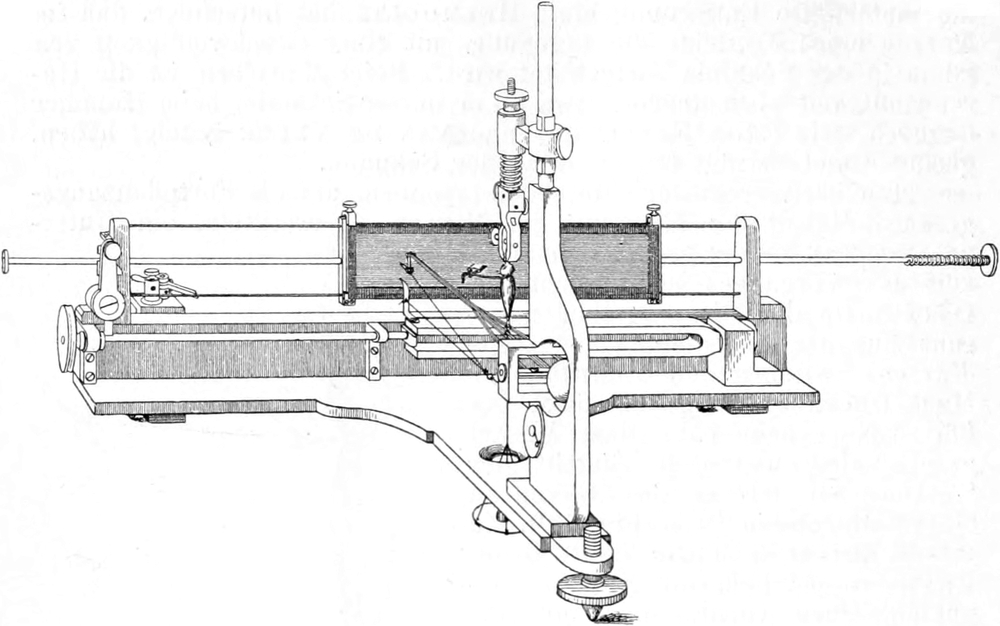
Fig. 170. D
U
B
OIS
-R
EYMOND
s
Federmyographion
.
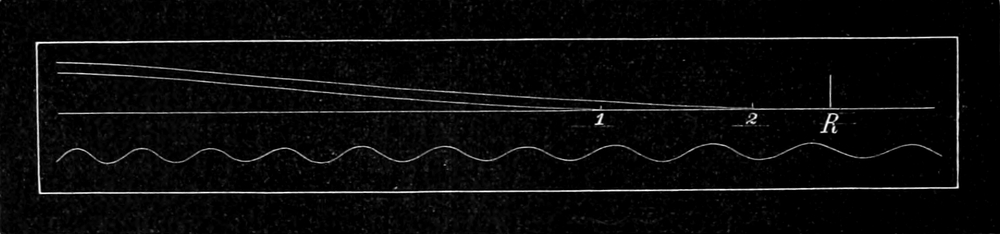
Fig. 171.
Aufsteigender Schenkel der myographischen Kurve, mit dem Federmyographion aufgenommen
.
R
Moment der Reizung,
1
Beginn der Zuckung bei Reizung des Nerven an einer entfernteren Stelle (
Fig. 169
),
2
Beginn der Zuckung bei Reizung unmittelbar am Muskel. Darunter die Stimmgabelkurve. Die Kurven sind von rechts nach links zu lesen.
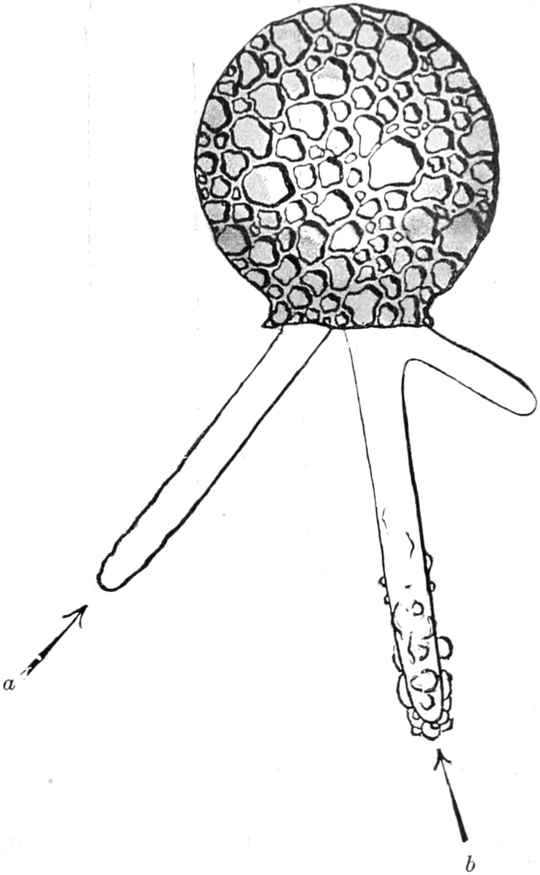
Fig. 172.
Difflugia urceolata
. Aus der von Sandkörnchen gebauten urnenförmigen Schale treten 3 fingerförmige, hyaline Pseudopodien heraus. Bei
a
schwach lokal gereizt, bei
b
etwas stärker lokal gereizt.
Andere Formen der lebendigen Substanz leiten den Reizerfolg bedeutend langsamer und manche nur auf ganz kurze Entfernungen hin, wobei der Reizerfolg mit der Entfernung allmählich erlischt. Man sagt: die Erregung erleidet ein „Dekrement“ in ihrem Verlauf. Im normalen Nerven dagegen erleidet die Erregung niemals ein Dekrement, sondern wird durch die ganze Länge der Nervenfaser in ungeschwächter Intensität fortgeleitet. Bei sehr langsam leitenden Objekten ist die Geschwindigkeit der Erregungsleitung mit dem Auge zu verfolgen. So kann man z. B. bei Difflugia, einem Rhizopoden mit zierlichem, aus Sandkörnchen gebautem Gehäuse, die Leitungsgeschwindigkeit der Erregung unter dem Mikroskop an den langen, fingerförmigen Pseudopodien sehr gut daran erkennen, daß sich von der Reizstelle her fortschreitend an der Oberfläche des Pseudopodienplasmas tröpfchenartige Ausbuchtungen bilden. Reizt man ein solches Pseudopodium durch Berührung mit einer Nadel an der Spitze nur schwach, so breitet sich der Reizerfolg nur auf eine kurze Strecke hin aus, indem die Oberfläche des Pseudopodiums nur leicht wellig wird (Fig. 172 a). Reizt man dagegen stärker, so ist der Reizerfolg stärker und wird bedeutend weiter fortgeleitet (Fig. 172 b). Stets aber nimmt die Größe des Reizerfolges mit der Entfernung von der Reizstelle her ab und erlischt schließlich ganz[357]. Eine ungemein geringe Erregungsleitung findet man bei manchen Rhizopoden mit fadenförmigen Pseudopodien, z. B. bei Orbitolites (vergl. Fig. 111, p. 281). Hier bleibt die Erregung selbst bei stärkster Reizung, wie sie die Durchschneidung eines Pseudopodiums vorstellt, auf die allernächste Umgebung der Reizstelle beschränkt, indem sich das Protoplasma hier zu einem oder mehreren kleinen Kügelchen zusammenballt. Diese Kügelchen gleiten zwar auf dem Pseudopodienfaden, der sich dadurch zu verkürzen beginnt, in zentripetaler Richtung entlang, und zwar eine sehr weite Strecke, indem sie sich allmählich wieder auflösen und ihre Substanz in den zentralen Zellkörper hineinfließen lassen (Fig. 173), aber ihre Fortbewegung ist nicht als eine wirkliche Fortleitung der Erregung anzusehen[358], sondern lediglich der Ausdruck des Stofftransports der gereizten Protoplasmamasse nach dem Zellkörper hin, denn das Protoplasma in der Umgebung der Kügelchen zeigt weiter keine Erregungssymptome, sondern strömt sogar ruhig in zentrifugaler Richtung weiter vor.
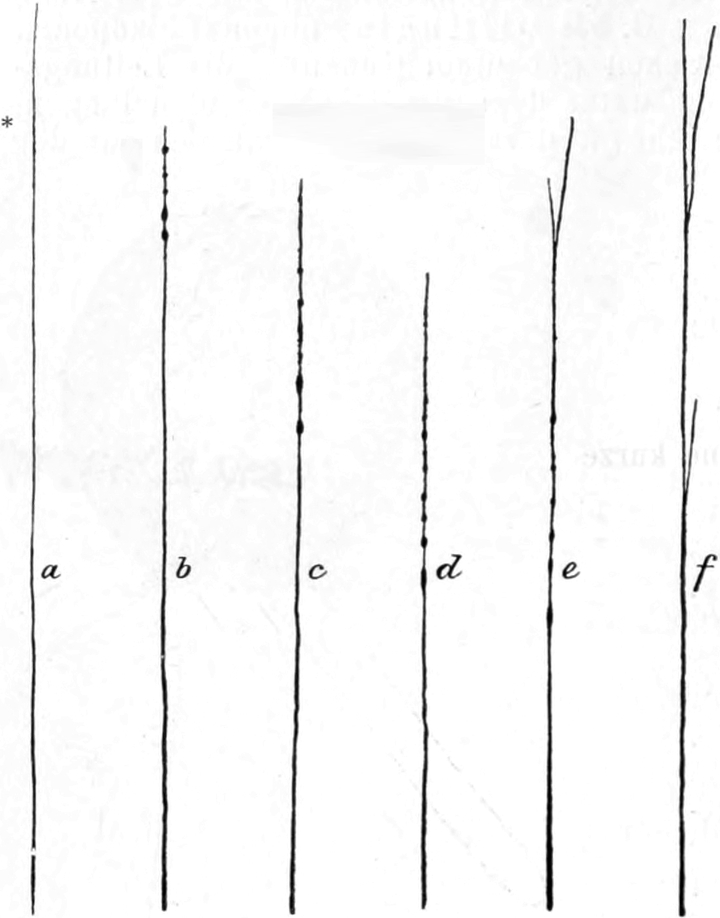
Fig. 173.
Pseudopodium von Orbitolites
.
a
Bei * durchschnitten.
b
Reizerfolg (Kugelbildung des Protoplasmas) nur auf die nächste Umgebung der Reizstelle beschränkt.
c
–
f
Stofftransport. Die gereizten Massen werden auf dem Pseudopodium entlang nach dem zentralen Zellkörper transportiert, ihre Substanz breitet sich allmählich wieder aus (
e
,
f
), während das ungereizte Protoplasma keine Erregungssymptome zeigt, sondern zentrifugal weiterfließt, so daß sich das Pseudopodium bald wieder verlängert (
e
,
f
).
Aber zwischen der sehr geringen Erregungsleitungsfähigkeit und Erregungsleitungsgeschwindigkeit bei Orbitolites und der ungeheuren des Nerven finden sich bei den verschiedensten lebendigen Objekten die mannigfaltigsten Uebergänge. Die quergestreifte Muskelfaser leitet schon bedeutend langsamer als der Nerv, die glatte Muskelfaser noch viel langsamer als die quergestreifte usf. So ließen sich die lebendigen Substanzen nach dem Grade ihrer Erregungsleitungsgeschwindigkeit zu einer langen Reihe mit den feinsten Uebergängen anordnen.
II. Die Reizwirkungen an der Zelle.
Nach dieser allgemeinen Erörterung der einzelnen Momente des Reizungsvorgangs können wir nunmehr zur Betrachtung der Reizwirkungen selbst übergehen.
Da die einzelne Zelle nicht alle ihre Lebensäußerungen in gleichem Grade auffällig erkennen, sondern je nach ihrer spezifischen Leistung irgendeine Seite, sei es des Stoffwechsels, sei es des Formwechsels, sei es endlich des Energiewechsels, äußerlich mehr in den Vordergrund treten läßt, so ist es zweckmäßig, für jede Lebensäußerung eine andere Zellform zum Versuch auszuwählen, welche die betreffende Lebensäußerung gerade besonders deutlich zum Ausdruck bringt. Dadurch ist wieder eine gesonderte Betrachtung des Stoffwechsels, der Formbildung und des Energieumsatzes an verschiedenen Objekten geboten, die uns aber nie verführen darf, diese verschiedenen Gruppen von Lebensäußerungen als etwas voneinander Unabhängiges zu betrachten. Das Bewußtsein, daß es sich nur um die gesonderte Betrachtung der verschiedenen Seiten eines und desselben Vorgangs handelt, darf uns dabei nie verlassen.
A. Die Wirkungen der verschiedenen Reizqualitäten.
1. Die Wirkungen chemischer Reize.
Die Zahl der chemischen Körper, die, mit der lebendigen Substanz in Berührung gebracht, überhaupt in chemische Beziehung zu ihren Bestandteilen treten, ist eine ungeheuer große, aber nur ein geringer Teil von ihnen ist auf seine Reizwirkungen hin bisher untersucht worden. Eine umfassende, nach systematischen Gesichtspunkten unternommene, vergleichend-zellularphysiologische Untersuchung der chemischen Reize und ihrer Wirkungen würde zwar eine sehr lange Zeit erfordern, dafür aber auch sicher sehr wertvolle Resultate liefern. Es würde durch solche Untersuchungen die heutige Toxikologie und Pharmakologie, die so vielfach nur die rein äußerlichen sekundären Wirkungen der chemischen Stoffe kennt, eine wesentliche und höchst notwendige Vertiefung erfahren, denn gerade in diesen Wissenschaften ist die Verwertung allgemein-physiologischer Gesetze und Erfahrungen ein sehr dringendes Bedürfnis. Vorläufig sind unsere Kenntnisse der chemischen Reize und ihrer Wirkungen aber noch so lückenhafte, daß von einer methodischen Zusammenfassung derselben kaum die Rede sein kann. Dazu kommt noch ein anderes Moment. In sehr vielen Fällen, in denen irgendwelche chemische Stoffe auf die lebendige Substanz einwirken, ist früher eine Erfahrung kaum berücksichtigt worden, die erst durch die neuere Entwicklung der physikalischen Chemie mehr und mehr an Bedeutung gewonnen hat, das ist die Erfahrung, daß mit der rein chemischen Wirkung unter Umständen eine osmotische Wirkung verknüpft ist. Beide Wirkungen sind bisher nur selten in genügender Weise differenziert worden, und so muß es noch heute in sehr vielen Fällen unentschieden bleiben, ob die Wirkungen, die ein chemischer Stoff an der lebendigen Substanz hervorbringt, allein auf Rechnung des rein chemischen Reizes, oder auf Rechnung des osmotischen Reizes, oder aber auf Rechnung beider zu setzen ist. Es wird eine der wichtigsten Aufgaben der künftigen Reizphysiologie sein, gerade die Wirkungen osmotischer Reize genauer von denen der rein chemischen Reize zu differenzieren.
a) Erregungswirkungen.
Als chemische Reize, die auf den Stoffwechsel erregend wirken, können wir allgemein die positiven Schwankungen in der Menge der zugeführten Nahrungsstoffe auffassen. Das beste Beispiel liefern uns die Zellen der verschiedenen Gewebe des menschlichen Körpers, deren wichtigsten Nahrungsstoff das Eiweiß bildet. Legen wir das alte klassische Kostmaß von VOIT[359] zugrunde, so braucht ein kräftiger Mann, wenn er stark arbeitet, 118 g Eiweiß, um sein Stickstoffgleichgewicht zu erhalten, d. h. um die aus dem Zerfall der lebendigen Substanz seiner Zellen stammende und durch den Harn abgeführte Stickstoffmenge wieder zu ersetzen. Wird nun diese als Lebensbedingung zu betrachtende Menge von zugeführtem Eiweiß gesteigert, wie das im Durchschnitt bei den meisten in guten Verhältnissen lebenden Menschen der Fall ist, so wird die mehr zugeführte Eiweißmenge nur zu einem äußerst geringen Teil zum Aufbau neuer Zellen, zur Vermehrung der lebendigen Substanz verwertet, dagegen zum allergrößten Teil zwar von den Zellen der Gewebe in die lebendige Substanz aufgenommen, aber auch sofort weiter gespalten, um in den Stoffen der regressiven Eiweißmetamorphose (Harnstoff, Harnsäure, Kreatinin etc.) fast vollständig mit dem Harn den Körper wieder zu verlassen. Die Steigerung der Eiweißzufuhr über ein bestimmtes Maß (118 g) hinaus bewirkt also eine entsprechende Steigerung sowohl des assimilatorischen als des dissimilatorischen Stoffwechsels der Gewebezellen.
Ein ähnliches Verhältnis haben wir im Pflanzenreiche. Die Kohlensäure der Luft dient den Pflanzen als Nahrung und wird in den Chlorophyllkörperchen der Blattzellen gespalten. Der freiwerdende Kohlenstoff wird dann mit dem durch die Wurzeln aufgenommenen Wasser zusammen zur Synthese der Stärke, zur Assimilation verwendet. Wird nun der Pflanze mehr Kohlensäure zugeführt, als in der Luft enthalten ist, als ihre Lebensbedingung vorstellt, so steigert sich bis zu einem bestimmtem Grade in gleichem Maße auch die Kohlensäurespaltung und die Stärkeassimilation. Die Steigerung der Nahrungsmenge bedingt also auch bei der Pflanze eine Steigerung des Stoffwechsels.
Allein, das ist doch nicht ganz allgemein gültig. Vom Sauerstoff wissen wir wenigstens, daß eine Steigerung seiner Menge über das zum Leben notwendige Maß hinaus im wesentlichen ohne Einfluß auf den Stoffwechsel der Gewebezellen bleibt. Die Gewebezellen des menschlichen Körpers z. B. sind innerhalb weiter Grenzen vom Prozentgehalt des Sauerstoffs in der Luft unabhängig und zeigen keine Steigerung des Stoffwechsels bei Erhöhung der Sauerstoffzufuhr. Wie weit freilich das gleiche auch für freilebende Zellen und die Zellen niederer Tiere gilt, bedarf noch der Untersuchung.
In manchen Fällen führt die gesteigerte Nahrungszufuhr mit der Steigerung des Stoffwechsels auch eine deutlich erkennbare Beschleunigung der Formbildungsprozesse herbei. Während nämlich, wie wir sahen, bei den Gewebezellen des menschlichen Körpers die über das notwendige Maß hinaus zugeführte Nahrungsmenge unter normalen Verhältnissen bis auf einen sehr geringen Bruchteil vollständig wieder zersetzt und nicht zur Vermehrung der lebendigen Substanz gebraucht wird, findet bei vielen einzelligen Organismen, besonders bei Bakterien und Infusorien, durch Steigerung der Nahrungszufuhr vorwiegend eine Steigerung der assimilatorischen Prozesse und nicht in gleichem Maße auch der dissimilatorischen Stoffwechselprozesse statt. Die Folge davon ist eine Vermehrung der lebendigen Substanz, eine „Mästung“, die sich in schnellem Wachstum und fortwährender Zellteilung äußert. Bringen wir z. B. Fäulnisbakterien (Bacterium termo, Spirillum undula etc.) aus einer Flüssigkeit, in der sie in spärlicher Individuenzahl leben, in eine gute Nährlösung, etwa in einen Heuaufguß, so fangen sie sofort an, sich in ganz enormer Weise zu vermehren, bis aus den wenigen Bakterien, mit denen wir die Nährlösung infizierten, eine Menge von vielen Millionen sich entwickelt hat. Setzen wir in einen solchen von Fäulnisbakterien wimmelnden Heuaufguß ein Paramaecium, ein Wimperinfusor, das sich von Fäulnisbakterien nährt, so können wir aus diesem einen Infusor durch fortgesetzte Zellteilung in wenigen Tagen Tausende entstehen sehen, so daß sie die Flüssigkeit milchig trüben. So enorm wird bei diesen Mikroorganismen die assimilatorische Stoffwechselphase durch den Nahrungsüberfluß gesteigert!
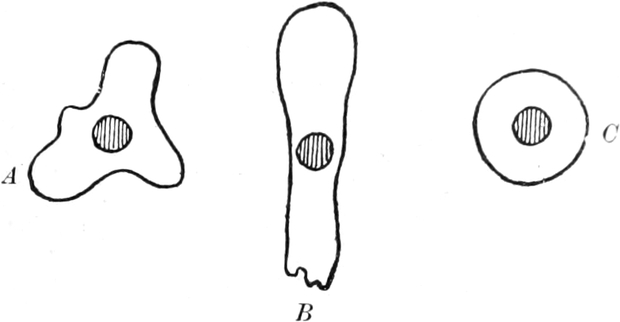
Fig. 174.
Amöbe
.
A
Pseudopodien nach verschiedenen Richtungen ausstreckend,
B
mit langem Pseudopodium in
einer
Richtung kriechend (Amoeba-limax-Form),
C
auf chemische Reizung kugelig kontrahiert.
Unter pathologischen Verhältnissen kommen auch an den Gewebezellen des menschlichen Körpers ähnliche Tatsachen vor, und die moderne Pathologie kennt in den verschiedenen Arten von pathogenen „Neubildungen“ oder Geschwülsten, zu denen auch die bösartigen Krebsgeschwülste gehören, eine ganze Reihe analoger Fälle. Diese Geschwülste (Carcinome, Sarkome, Myome, Fibrome etc.) entstehen dadurch, daß die Zellen eines normalen Gewebes, z. B. der Oberhaut (Epidermis), plötzlich anfangen, sich rapide zu teilen. So erfolgt an der betreffenden Stelle eine enorme Zellvermehrung, eine Wucherung, die zu einer häufig überaus umfangreichen Geschwulst führt, die aber meist ebenso schnell auch wieder in einem nekrotischen Zerfall der rapide entwickelten Zellen endet. Der Anlaß zu dieser rapiden Zellvermehrung liegt in vielen Fällen jedenfalls in chemischen Reizen, welche auf die betreffenden Zellen einwirken. Wenn es auch höchst zweifelhaft ist, ob die Entstehung der Geschwülste, vor allem des Carcinoms, eine Folge von Infektion durch bestimmte Mikroorganismen ist, so neigt doch die Mehrzahl der Pathologen zu der Ansicht, daß sie auf eine Veränderung in der Ernährung der Zellen zurückzuführen ist.
Weit augenfälliger als die Wirkungen auf den Stoffwechsel und die Formbildung sind die Wirkungen der chemischen Reize auf den Energieumsatz der lebendigen Substanz, besonders auf die Bewegung. Ueber die Wirkungen chemischer Reize auf die amöboiden Bewegungen der nackten Protoplasmamassen, wie sie die Rhizopoden (Amöben, Myxomyceten, Polythalamien etc.) und die Protoplasmaleiber der Pflanzenzellen vorstellen, haben uns die klassischen Untersuchungen von MAX SCHULTZE[360] und KÜHNE[361] schon vor mehr als 40 Jahren Aufschluß gegeben. Die am weitesten verbreitete Wirkung ist hier die Auslösung einer Kontraktion, d. h. die Einziehung der Pseudopodien, nachdem häufig vorher im Beginn der Einwirkung die Protoplasmaströmung beschleunigt war. Die verschiedensten chemischen Stoffe können diese Reizwirkung hervorrufen. Läßt man z. B. zu einem Tropfen Wasser, in dem sich viele Amöben befinden, eine Lösung von 0,1 Proz. Salzsäure oder auch von 1 Proz. Kalihydrat oder schließlich auch andere Säuren, Alkalien und Salze in geringen Konzentrationen zufließen, so ziehen die Amöben alsbald ihre Pseudopodien ein und nehmen Kugelgestalt an. Dieselbe Wirkung übt die Kohlensäure aus, wenn man die Amöben in der Gaskammer[362] einige Zeit der Wirkung dieses Gases aussetzt. Andere nackte Protoplasmamassen verhalten sich allen diesen chemischen Reizen gegenüber ebenso. So zieht das zierliche, mit seinen geraden, strahlenförmigen Pseudopodien wie eine kleine Sonnenkugel aussehende Actinosphaerium Eichhornii, mit diesen Reizen in Berührung gebracht, ebenfalls mehr und mehr seine Pseudopodien ein, indem das Protoplasma derselben sich zu lauter kleinen Kügelchen und Spindelchen zusammenballt, die in zentripetaler Richtung langsam in den Zellkörper hineinfließen[363].
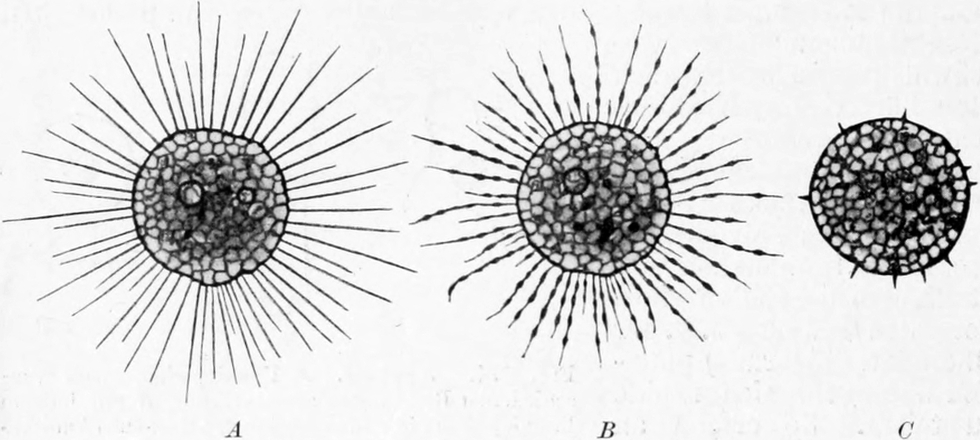
Fig. 175.
Actinosphaerium bei chemischer Reizung
.
A
ungereizt,
B
im Beginn der Reizung,
C
nach einiger Dauer der Reizung (die Pseudopodien sind fast ganz eingezogen).
Ueber die Wirkung chemischer Reize auf die Flimmerbewegung haben besonders ENGELMANN[364] und ROSSBACH[365] eingehende Untersuchungen angestellt. Auch hier haben viele ganz verschiedenartige Stoffe, wie Säuren, Alkalien und Salze, ferner manche Alkaloide, eine übereinstimmende Wirkung auf die Wimper- und Geißeltätigkeit, indem sie die Geschwindigkeit des Wimperschlages bedeutend erhöhen. Die Folge davon ist eine beträchtliche Steigerung des motorischen Effekts, die man namentlich bei freilebenden Flimmerzellen, wie sie die Infusorien vorstellen, in der starken Beschleunigung ihrer Bewegung deutlich beobachten kann. Die Wimperinfusorien rasen förmlich nach Zusatz gewisser chemischer Reagentien mit dem Schlage ihrer Wimpern durch das Gesichtsfeld dahin.
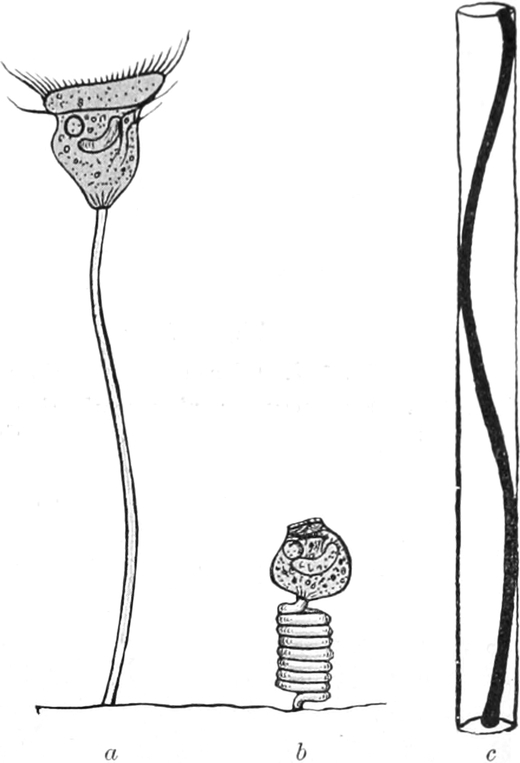
Fig. 176.
Vorticella
.
a
ausgestreckt,
b
nach chemischer Reizung kontrahiert (Stielmuskel ist nicht zu sehen),
c
ein Stück der Stielscheide mit dem Muskelfaden, stark vergrößert.
Auf die verschiedenen Formen der Muskelfasern (Myoide, glatte Muskelfasern, quergestreifte Muskelfasern) wirken mannigfaltige chemische Reize in analoger Weise wie auf nackte Protoplasmamassen, indem sie Kontraktionen auslösen. Setzt man zu einem Tropfen Wasser, in dem sich viele Vorticellen befinden, die auf ihren ausgestreckten Stielmuskeln anmutig ihre Köpfchen wiegen, chemische Stoffe der oben genannten Art, so zucken sofort alle Vorticellen zusammen, indem sich ihre Stielmuskeln in ihrer elastischen Scheide plötzlich kontrahieren und zu zierlichen Spiralwindungen aufrollen (Fig. 176 b). Ebenso zucken quergestreifte Muskeln auf chemische Reizung plötzlich zusammen. Klemmt man z. B. den Schneidermuskel (Musculus sartorius) des Frosches, der ein schmales Band von nahezu parallelen, quergestreiften Muskelfasern bildet, mit dem daran befindlichen Unterschenkelknochen in einen Muskelhalter ein und zieht durch den Beckenknochen, den der Muskel mit dem Unterschenkel verbindet, einen Faden, der über eine Rolle geleitet ist und durch ein kleines Gewicht in Spannung gehalten wird, so kann man an einem Signalhebel, der an der Rolle befestigt ist, jede Bewegung des Muskels beobachten (Fig. 177). Bringt man nun ein Schälchen mit kohlensaurem Ammon unter den Muskel, so wird der Muskel durch die aufsteigenden Ammoniakdämpfe chemisch gereizt und führt Zuckungen aus, die durch den Signalhebel deutlich angezeigt und auf einer berußten Trommel verzeichnet werden können. Eine sehr merkwürdige Tatsache beobachtete BIEDERMANN[366] am Musculus sartorius, wenn er ihn bei einer Temperatur von 3–10° C in einer Lösung von 5 g Kochsalz, 2 g alkalischem, phosphorsaurem Natron und 0,5 g kohlensaurem Natron auf 1 l Wasser hängen ließ (Fig. 178). Dann zeigte nämlich der Muskel rhythmische Zuckungen, ein Verhalten, das sonst nie im Leben dieses Muskels beobachtet wird und lebhaft an die rhythmische Bewegung der Herzmuskelfasern erinnert. Es ist diese Beobachtung besonders deshalb interessant, weil sie an einem der einfachsten Beispiele zeigt, daß ein kontinuierlich einwirkender Reiz zu einer rhythmischen intermittierenden Erregung der lebendigen Substanz führen kann. Für die Theorie der rhythmischen Tätigkeiten, die noch immer recht in Dunkel gehüllt ist, wird daher dieser Fall besondere Beachtung erfordern.
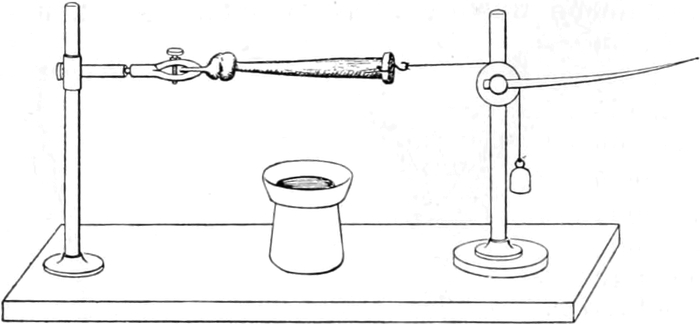
Fig. 177.
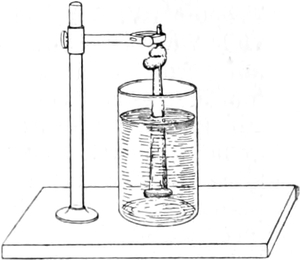
Fig. 178.
Fig. 177. Chemische Reizung des Sartorius vom Frosch.
Fig. 178. Erzeugung rhythmischer Kontraktionen am Sartorius durch chemische Reizung.
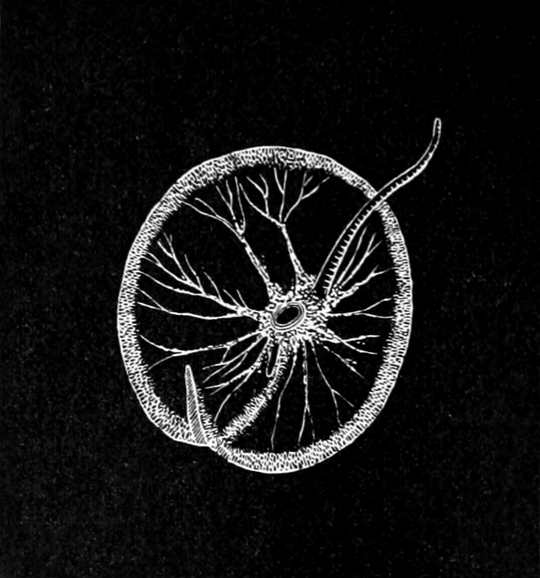
Fig. 179.
Noctiluca miliaris, eine marine Geißelinfusorienzelle
.
Auch die Produktion anderer Energieformen, nicht nur der Bewegung, wird durch chemische Reize erregt. Da es aber zu weit führen würde, alle Arten von Erregungswirkungen chemischer Reize zu betrachten, so wollen wir uns darauf beschränken, nur noch die Erregung der Lichtproduktion anzuführen. Für diese Untersuchung sind ebenfalls wieder die einzelligen Organismen am geeignetsten, denn bei ihnen sind alle Verhältnisse am übersichtlichsten und einfachsten. Von vielen einzelligen Organismen, Bakterien, Radiolarien etc., ist es bekannt, daß sie auf chemische Reize ebenso wie auf verschiedene andere Reize hin Licht entwickeln. Am häufigsten und genauesten untersucht ist aber die Lichtproduktion bei den eigentümlichen Flagellaten, die in unseren nordischen Meeren in der Regel das flächenhafte Meerleuchten erzeugen, bei den Noktiluken (Fig. 179). Zuletzt hat MASSART[367] die Wirkung chemischer Reize bei diesen Organismen wieder ausführlich studiert. In ein Gefäß mit Meerwasser, in dem sich die Noktiluken ruhig, und ohne zu leuchten, an der Oberfläche aufhielten, setzte er vorsichtig mit einer Pipette verschiedene Stoffe, wie destilliertes Wasser, eine konzentrierte Kochsalzlösung, eine Zuckerlösung etc., und ließ den Tropfen sich langsam an der Oberfläche des Meeres ausbreiten. Die Folge davon war, daß alle Noktiluken, zu denen nach und nach die zugesetzten Flüssigkeiten hindrangen, sobald sie mit denselben in Berührung kamen, plötzlich hell aufleuchteten, so daß der anmutige Anblick eines langsam sich erweiternden leuchtenden Kreises an der Oberfläche des Meerwassers entstand.
b) Lähmungswirkungen.
Den erregenden Wirkungen der eben genannten chemischen Reize gegenüber stehen die Wirkungen bestimmter chemischer Stoffe, welche die Lebensäußerungen herabsetzen oder ganz lähmen. Diese Stoffe werden daher als „Narcotica“ oder „Anaesthetica“ bezeichnet. Zu ihnen gehören vor allem diejenigen, die auf alle Formen der lebendigen Substanz und auf alle Lebensäußerungen lähmend wirken: Alkohol, Aether, Chloroform und Chloralhydrat. Zu diesen gesellt sich die große Gruppe der Alkaloide, deren Vertreter, wie Morphin, Chinin, Veratrin, Digitalin, Strychnin, Curare etc., zum Teil eine unter den verschiedenen Formen der lebendigen Substanz weit verbreitete, zum Teil aber auch eine nur auf ganz bestimmte Zellformen, vor allem auf die Zellen des Zentralnervensystems, beschränkte Wirkung besitzen.
Die lähmenden Wirkungen der Narcotica auf den Stoffwechsel sind besonders von CLAUDE BERNARD[368] studiert worden. Der bekannte Pariser Physiologe hat gezeigt, daß der Stoffwechsel z. B. durch Chloroformnarkose in den verschiedenartigen Zellformen unterdrückt wird.
So ist z. B. an Pflanzenzellen die Lähmung des Stoffwechsels, und zwar speziell die Aufhebung der Kohlensäurespaltung im Chlorophyll, sehr leicht festzustellen. CLAUDE BERNARD benutzte dazu die im Wasser lebende Fadenalge Spirogyra, deren zylindrische Zellen der Länge nach zu feinen Fädchen aneinandergereiht sind und ein zierliches spiralig gewundenes Chlorophyllband besitzen (Fig. 180). Unter zwei Glasglocken, von denen die eine mit kohlensäurehaltigem Wasser, die andere mit ebensolchem Chloroformwasser gefüllt war, brachte er je eine Portion der Spirogyrafäden und setzte die Glocken dem Sonnenlichte aus. Nach einiger Zeit hatten die Spirogyrazellen der ersten Glocke eine beträchtliche Menge Sauerstoff entwickelt, während in der zweiten, mit kohlensäurehaltigem Chloroformwasser gefüllten Glocke die Sauerstoffentwicklung, also die Kohlensäurespaltung, vollständig ausgeblieben war.
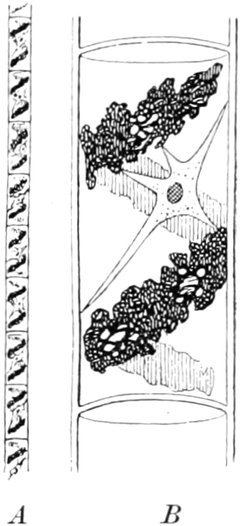
Fig. 180.
Spirogyra, eine Fadenalge
.
A
Stück eines Fadens aus vielen aneinandergereihten Zellen bestehend.
B
Einzelne Zelle mit dem charakteristischen, spiralförmigen Chlorophyllband und dem sternförmigen Protoplasmakörper.
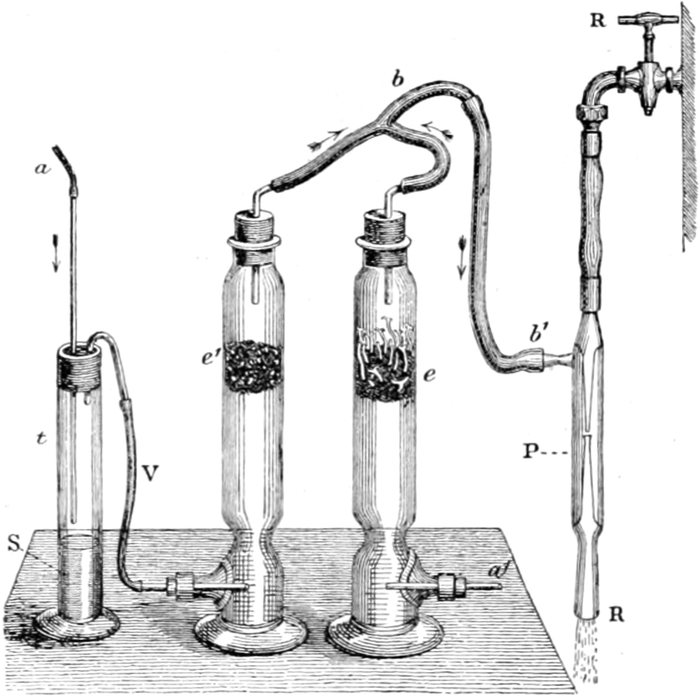
Fig. 181.
Apparat zur Vergleichung keimender Pflanzensamen in normalem Zustande und in der Narkose
. Nach C
LAUDE
B
ERNARD
.
Entsprechend der Aufhebung des Stoffwechsels machen sich in der Narkose auch Lähmungen der Formbildungsvorgänge geltend. Das Wachstum und die Zellteilung hört auf. Um die Lähmung des Wachstums zu konstatieren, stellte CLAUDE BERNARD folgende Versuchsanordnung auf (Fig. 181). In zwei leere zylindrische Flaschen, welche unten einen Tubus besaßen, der ebenso wie die Flaschenhälse mit einem von Glasröhren durchbohrten Gummipfropfen verschlossen war, steckte er in halber Höhe einen feuchten Schwamm, auf dem sich keimende Pflanzensamen befanden. Der Tubus der einen Flasche kommunizierte durch einen Gummischlauch mit einem Glaszylinder (t), der an seinem Boden eine Aetherschicht (S) enthielt und oben ebenfalls einen Pfropfen trug, durch den außer dem Gummischlauch (V) noch ein offenes Glasrohr (a) von außen bis zu halber Höhe hineinragte. Der Tubus der anderen Flasche kommunizierte durch ein Glasrohr (a1) direkt mit der äußeren Luft. An den Glasröhren, die aus den Pfropfen der Flaschenhälse nach außen führten, war ein gabelig geteilter Gummischlauch befestigt (b), der mit einer Aspirationsvorrichtung (P) in Verbindung stand. Wurde das Wasser der Wasserleitung (R) durch den Aspirator gelassen, so saugte dieser die Luft durch die beiden Glasflaschen, von denen nun die eine direkt die reine Luft von außen durch den Tubus a1 wieder ergänzte, während die andere nur die mit Aetherdämpfen beladene Luft durch den Glaszylinder t in sich aufnehmen konnte. Auf diese Weise ging ein kontinuierlicher Strom von reiner Luft durch die keimenden Samen des einen und ein Strom von Aetherdampf durch die Samen des anderen Zylinders. Nach einigen Tagen waren bei dieser Anordnung diejenigen Samen, die in reiner Luft keimten, zu langen Keimlingen ausgewachsen (e), während die vom Aetherdampf umspülten Samen überhaupt kein Wachstum zeigten (e1), ohne jedoch die Fähigkeit, in reiner Luft zu keimen, eingebüßt zu haben.
Die lähmende Wirkung von Chloralhydratlösungen auf die Zellteilung haben die Brüder HERTWIG[369] an Seeigeleiern untersucht. Ließen sie eine 0,2–0,5-proz. Lösung von Chloral auf die sich zur Entwicklung anschickenden Eier einige Zeit (5 Minuten bis 3 Stunden) einwirken, so ging die Zellteilung nicht weiter. Sowohl der Zellkern verharrte dabei in dem Stadium der Teilung, in dem er sich gerade befand, als auch das Protoplasma, in dem die Strahlenbildungen um die Zentrosomen vollständig ausblieben. Erst nachdem das Chloral längere Zeit mit reinem Meerwasser aus den Eiern ausgewaschen war, ging die Entwicklung und Zellteilung wieder weiter.
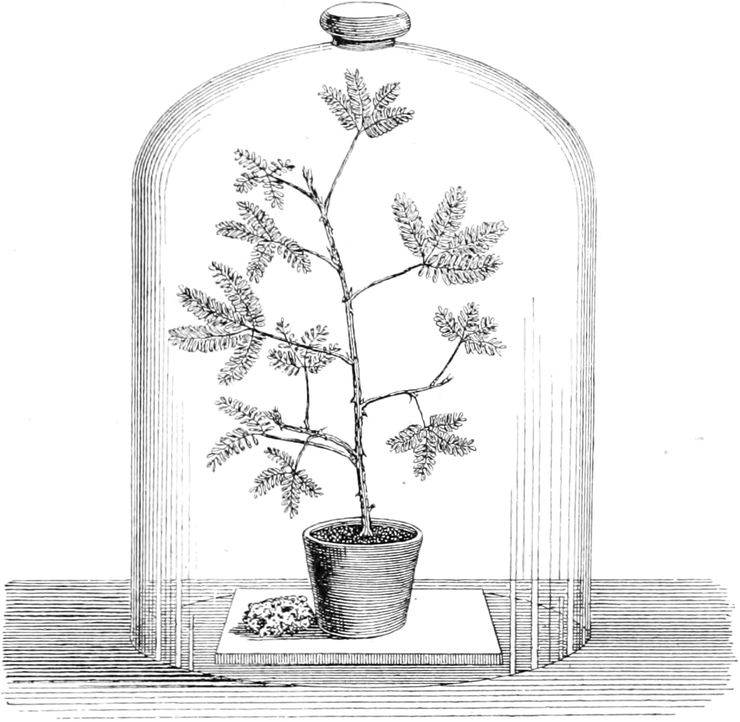
Fig. 182.
Mimosa pudica in Aethernarkose
. Nach C
LAUDE
B
ERNARD
.
Schließlich werden auch die Energieumsetzungen durch die Narcotica gelähmt. Sowohl die kontinuierliche Energieproduktion als die Fähigkeit, auf Reize zu reagieren, wird herabgesetzt und hört schließlich ganz auf. Unter den Bewegungsformen hat das für die Turgeszenzbewegungen[370] der Mimosa pudica ebenfalls CLAUDE BERNARD gezeigt. Setzt man einen Blumentopf mit einer Mimose unter eine Glasglocke, unter der sich ein mit Aether getränkter Schwamm befindet (Fig. 182), so gelingt es nach einiger Zeit nicht mehr, durch Reize die bekannten Bewegungen, die in dem Senken der Zweige und Zusammenklappen der Blätter bestehen, an der Pflanze hervorzurufen. Die Reizbarkeit ist erloschen, die Pflanze ist in Narkose. „Eh bien!“ — sagt CLAUDE BERNARD — „chose singulière, les plantes commes les animaux peuvent être anesthésiées, et tous les phénomènes s’observent absolument de la même manière!“
Ebenso wie die Turgeszenzbewegungen hören auch die Wachstumsbewegungen der Pflanzen in der Narkose auf, und die sekretorischen Bewegungen der Diatomeen, Oscillarien, Desmidiaceen[371] bleiben aus.
Auch die Kontraktionsbewegungen werden durch die Narcotica gelähmt. Die Protoplasmabewegung der Amöben wird sistiert, nachdem die Amöben sich zur Kugel kontrahiert haben. Wie BINZ[372] fand, besitzt auf die amöboiden Bewegungen der Leukocyten besonders das Chinin eine stark lähmende Wirkung. Ueber die lähmende Wirkung der Narcotica auf die Flimmerbewegung hat ENGELMANN[373] ausgedehnte Untersuchungen angestellt. Ließ er in einer Gaskammer auf die Flimmerzellen von der Rachenschleimhaut eines Frosches Aether- oder Chloroformdämpfe einwirken, so trat nach einem schnell vorübergehenden Erregungsstadium, in dem die Bewegung beschleunigt war, ein Stillstand der Wimpern ein. War die Dauer der Einwirkung nicht zu lang gewesen, so trat die Bewegung nach Zufuhr von frischer Luft von neuem wieder auf. Ebenso verhält sich die Geißelbewegung der Spermatozoen, die durch Aether- und Chloroformdämpfe, sowie nach den Beobachtungen HERTWIGs[374] durch geringe Dosen von Chinin und Chloralhydrat vollständig zum Stillstand gebracht wird, so daß die Befruchtung des Eies durch ihre Bewegungslosigkeit verhindert wird. Auch bei Infusorien wird durch Zufuhr von Chloroformwasser nach kurzem Exzitationsstadium, in dem sie wie rasend durch das Wasser wirbeln, die Wimperbewegung sistiert. An einem Stentor können wir neben dieser Tatsache auch gleich die Lähmung der Myoide durch das Chloroformwasser beobachten. Während die Stentoren in ihrem ungestörten Zustande, mit ihrem Afterpol am Boden angeheftet, zu zierlicher Trompetenform ausgestreckt sind (Fig. 183 A) und nur von Zeit zu Zeit, teils spontan, teils infolge von äußeren Reizen, sich durch die Kontraktion ihrer feinen, im Exoplasma des Zellkörpers von oben bis unten verlaufenden Myoidfäden zu einer gestielten Kugel (Fig. 183 C) zusammenschnellen, nehmen sie in der Narkose nach plötzlichem Zusammenzucken im Beginn der Einwirkung ein Stadium mittlerer Kontraktion (Fig. 183 B) an, hören mit den Wimpern auf zu schlagen und zucken weder spontan noch auf Reizung mehr zu einer Kugel zusammen, bis durch Uebertragung in frisches Wasser die Narkose wieder gehoben wird. Wie die Erregbarkeit der glatten Myoidfäden wird auch die Erregbarkeit der quergestreiften Skelettmuskeln vollständig durch die Narkose aufgehoben. Ein Froschmuskel, der vorsichtig und langsam von ätherdampfhaltiger Luft umspült wird, ist durch keinerlei Reize mehr zum Zucken zu bringen. Dennoch stehen anscheinend die Lebensprozesse im Muskel nicht vollständig still, wie man aus der von BIEDERMANN[375] festgestellten Tatsache entnehmen muß, daß die Elektrizitätsproduktion bei der Reizung des Muskels in der Narkose noch ebenso erfolgt, als wenn der Muskel sich im normalen Zustande befände und sich noch kontrahieren könnte. Die gereizte Stelle, sowie der künstliche Querschnitt zeigt sich bei galvanometrischer Untersuchung ebenso wie unter normalen Verhältnissen elektrisch negativ gegenüber der ruhenden Partie. Es bleiben also auch in der Narkose noch gewisse Stoffwechselvorgänge unberührt bestehen, und das gilt nicht bloß vom Muskel, sondern von den Narkosezuständen aller lebendigen Substanz.
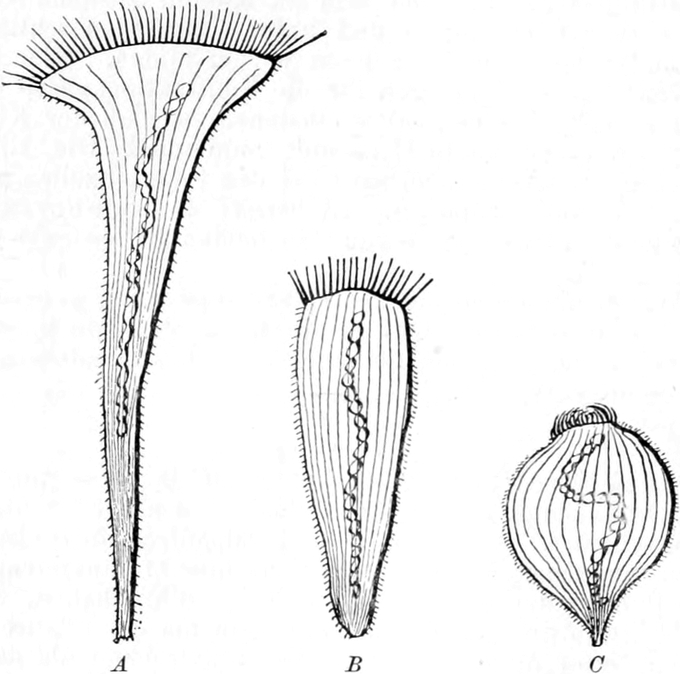
Fig. 183.
Stentor coeruleus
,
A
in der Ruhe ganz ausgestreckt,
B
im Zustande mittlerer Kontraktion wie beim freien Schwimmen,
C
vollständig kontrahiert.
Neuerdings hat MASSART auch[376] die Lichtentwicklung der Noktiluken durch Alkohol vollständig aufheben können, indem er über das Gefäß mit Meerwasser, in dem sich die Noktiluken ruhig an der Oberfläche schwimmend befanden, einige Lagen mit Alkohol getränkten Fließpapiers legte, so daß die Alkoholdämpfe auf die Noktiluken treffen mußten. Die Protisten waren dann nach kurzer Zeit durch keinen Reiz mehr zum Leuchten zu bringen.
Am bekanntesten schließlich sind die lähmenden Wirkungen der Narcotica auf die Tätigkeit der Ganglienzellen des Zentralnervensystems, sowohl auf diejenigen, welche motorische Impulse produzieren, d. h. die Muskeln zur Bewegung veranlassen, als auch auf die, welche zusammen die zentralen Bedingungen für die Sinnesempfindungen, für das Bewußtsein vorstellen. In der anästhesierenden Wirkung auf die Zellen des Zentralnervensystems liegt die außerordentliche praktische Bedeutung der Narcotica. Sie sind besonders durch die Aufhebung der Funktionen des Großhirns zu einer der größten Wohltaten der Menschheit geworden. Freilich zu einer gefährlichen Wohltat, denn der Mißbrauch der Narcotica, des Alkohols, des Morphiums zeitigt die verheerendsten Wirkungen und verwandelt die Wohltat in eines der größten Uebel, weil der Stoffwechsel der betroffenen Zellen dabei irreparable Schädigungen erfährt.
Fig. 184.
Ganglienzellen von einem morphinisierten Hunde
, nach der Methode von G
OLGI
behandelt. Bei
A
haben alle, bei
B
die meisten Protoplasmafortsätze rosenkranzförmiges Aussehen angenommen. Nach D
EMOOR
.
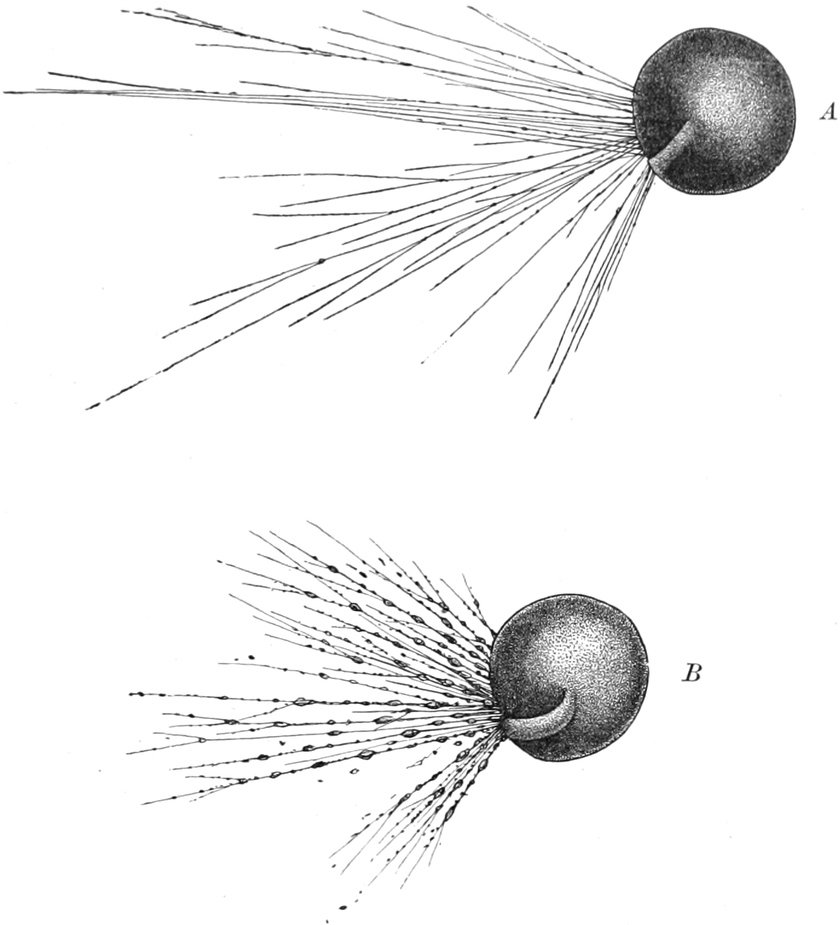
Fig. 185.
Amphistegina Lessonii
. Aus der linsenförmigen Kalkschale treten durch die Schalenöffnung fadenförmige Pseudopodien hervor.
A
normal,
B
in Chloroformnarkose.
Vor einiger Zeit haben eine Reihe von Forschern, wie LÉPINE, DUVAL, SOLVAY, DEMOOR, QUERTON u. a. die Ansicht aufgestellt, daß die Ganglienzellen eine gewisse amöboide Bewegungsfähigkeit besitzen, indem sie ihre Protoplasmafortsätze oder Dendriten innerhalb bestimmter Grenzen verkürzen und verlängern können. So glaubt sich z. B. DEMOOR[377], der diese Beweglichkeit als „Plastizität“ der Neurone bezeichnet hat, überzeugt zu haben, daß unter dem Einfluß des Morphiums in der Narkose, aber auch unter der Einwirkung anderer Reize sich deutliche Kontraktionssymptome an den Dendriten der Ganglienzellen bemerken lassen, die genau den Kontraktionsvorgängen entsprechen, welche starke Reize auf den verzweigten Pseudopodienfäden der Rhizopoden erzeugen. Beide Bilder sind in der Tat vollkommen übereinstimmend (vergl. Fig. 184 und 185 B). Die Dendriten der Neurone, etwa im Gehirn eines Hundes, zeigen am fixierten und mit der GOLGIschen Methode imprägnierten Präparat ein sehr charakteristisches perlschnurartiges Aussehen, indem sie ihr Protoplasma zu lauter kleinen Kügelchen und Spindelchen zusammengeballt haben (Fig. 184), wie das auch bei Rhizopoden (Fig. 185 B), z. B. Amphistegina, Orbitolites, Rhizoplasma etc., in der Narkose leicht zu beobachten ist[378]. Allein, es hat sich in neuerer Zeit, besonders durch die umfassenden Untersuchungen von WEIL und FRANK[379], herausgestellt, daß diese rosenkranzähnlichen oder „moniliformen“ Zustände der Dendriten lediglich Kunstprodukte sind, die durch die Fixierungs- und Imprägnationsmethoden erzeugt werden, und daß demnach kein einziger Beweisgrund für eine „Plastizität“ der Dendriten am lebendigen Neuron besteht. Damit ist aber auch den weitgehenden und zum Teil naiven Theorien der Narkose, des Schlafs, der Hemmungsvorgänge, der Bewußtseinsprozesse etc., die man in reicher Fülle und mit großer Begeisterung auf die Lehre von der „Plastizität“ der Dendriten aufgebaut hat, der Boden entzogen[380].
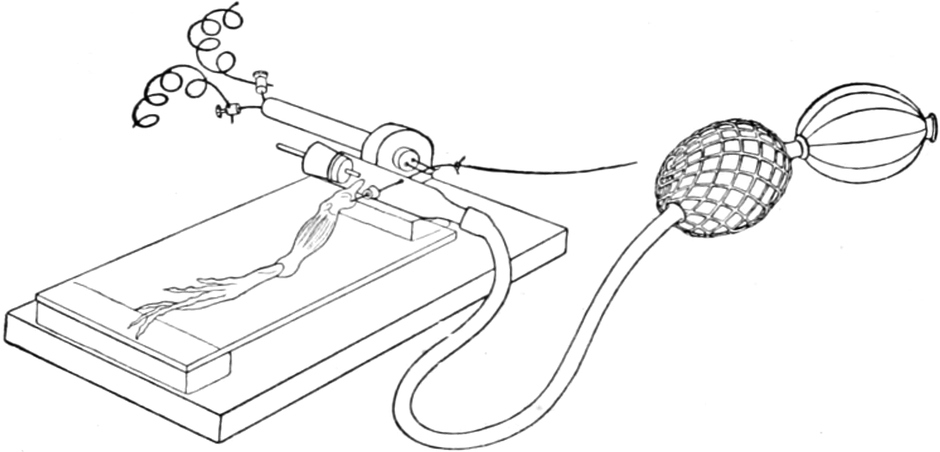
Fig. 186.
Vorrichtung für die lokale Narkose des Nerven
. Der Nerv des Nervmuskelpräparates vom Frosch ist durch die röhrenförmige Narkosekammer gezogen und mit seinem Ende über die Elektroden gelegt. Ein Gebläse treibt Aetherdämpfe resp. nachher zur Erholung Luft durch die Narkoseröhre.
Etwas resistenter als die Ganglienzellen sind die Nervenfasern der Neurone gegenüber den Narcoticis. Wenn bei Aether- oder Chloroformnarkose die Ganglienzellen der Zentra schon längst gelähmt sind, erweisen sich die Nervenstämme noch immer erregbar. Dennoch wird auch der Nerv durch Aether und Chloroform leicht vollständig gelähmt, wenn man ihn in einen mit Aetherdämpfen gefüllten Raum bringt. Dabei verliert der Nerv nicht bloß seine Erregbarkeit, sondern auch seine Leitfähigkeit. Präpariert man z. B. einen Nervus ischiadicus vom Frosch mit dem dazu gehörigen Unterschenkel frei und trennt man dieses Präparat oben an der Austrittsstelle des Nerven aus dem Wirbelkanal, nachdem der Nerv hier mit einem Faden angeschlungen ist, ab, so hat man ein sogenanntes Nervmuskelpräparat, an dem man sich von der Wirkung der Narkose auf den Nerven sehr bequem überzeugen kann. Zieht man nämlich den Nerven mit dem angeschlungenen Faden durch eine etwa 2 cm dicke Glasröhre, die in ihrer Längswand zwei gegenüberliegende Oeffnungen trägt, quer hindurch und bringt man das eine Ende der Röhre mit einem Gebläse in Verbindung, mittels dessen man ätherdampfbeladene Luft durch die Röhre hindurchblasen kann, die dann am anderen Ende der Röhre durch ein kleines Ansatzröhrchen wieder entweicht, so kann man auf diese Weise die in der Röhre befindliche Strecke des Nerven sehr schnell in Narkose versetzen (Fig. 186). Man findet dann, daß der Nerv die Fähigkeit der Erregungsleitung verliert. Prüft man nämlich seine Erregungsleitung, indem man das obere, außerhalb der Narkoseröhre befindliche Ende des Nerven mit zwei Platinelektroden reizt, so bemerkt man, daß nach kurzer Einwirkung der Aetherdämpfe die anfänglich bei jeder Reizung eintretenden Muskelzuckungen plötzlich ausbleiben und erst wiederkehren, wenn man statt der ätherdampfhaltigen Luft einige Zeit reine Luft mittels des Gebläses durch die Röhre hindurchbläst. Die in der Narkosekammer befindliche Strecke des Nerven wird also für die Erregungsleitung gewissermaßen durch das Narcoticum blockiert und wird erst wieder leitfähig, wenn die Narkose aufgehoben wird. Ebenso kann man auch im Tierkörper selbst eine noch in ihrem natürlichen Zusammenhang befindliche Nervenstrecke durch Narkose blockieren. Narkotisiert man z. B. einen intakten Muskelnerven im Körper des lebendigen Tieres lokal, indem man ihn an einer Stelle seines Verlaufs freilegt und mit einer kleinen von Aetherdampf erfüllten Kammer umschließt, so werden keine Impulse mehr vom Zentralnervensystem auf den dazugehörigen Muskel übertragen, weil der Nerv an der narkotisierten Stelle unwegsam geworden ist für den Leitungsvorgang. In diesem Zustande kann man den Nerven längere Zeit erhalten. Hebt man die Narkose wieder auf, so gewinnt er in einigen Minuten seine Erregbarkeit und Leitfähigkeit wieder. Man hat diese Tatsache in der Physiologie vielfach methodisch benutzt, wenn es bei Experimenten darauf ankam, die Impulse des Zentralnervensystems auf die peripherischen Organe, wie Muskeln, Drüsen etc., auszuschalten[381].
Ueber die Art und Weise, wie die Narcotica ihre lähmende Wirkung in der lebendigen Substanz entfalten, sind wir leider noch immer vollständig im Dunkeln. Indessen haben wenigstens die Untersuchungen der letzten Jahre eine Reihe von Tatsachen kennen gelehrt, die für die Theorie der Narkose von größter Wichtigkeit sind. Bei der Erforschung des Mechanismus der Narkose entsteht zunächst die Frage, worin eigentlich das Gemeinschaftliche der verschiedenartigen Stoffe liegt, die alle übereinstimmend eine lähmende Wirkung auf die Vorgänge in der lebendigen Substanz ausüben. Man hat daher die verschiedenen Narcotica, wie Alkohol, Aether, Chloroform, Chloralhydrat, Kohlensäure, Stickoxydul etc. miteinander verglichen, ohne daß es indessen gelungen wäre, in so verschiedenartigen chemischen Stoffen Atomkomplexe zu finden, die in chemischer Beziehung irgend etwas Gemeinsames hätten. Erst in neuester Zeit ist HANS MEYER[382], ausgehend von der Alkoholnarkose der Nervenzellen, und unabhängig von ihm E. OVERTON[383] auf die Tatsache aufmerksam geworden, daß die Löslichkeit der Narcotica in Fetten und Oelen eine große Rolle spielt bei ihrer narkotisierenden Wirkung, daß nämlich im wesentlichen solche Stoffe narkotisierend wirken, die leichter in fettähnlichen Stoffen als im Wasser löslich sind. Dabei ist im allgemeinen ihre narkotisierende Wirkung um so größer, je mehr der Teilungskoeffizient, der ihre Verteilung in einem Gemisch von Wasser und fettähnlichen Substanzen bestimmt, zugunsten der letzteren ausfällt. Es ist nach diesem Gesichtspunkt eine Anzahl von narkotisierend wirkenden Stoffen geprüft und, was noch wichtiger ist, es ist auf Grund dieser Erfahrung die relative Stärke der narkotisierenden Wirkung von manchen bisher noch nicht als Narcotica verwendeten Stoffen vorausgesagt worden, so daß es zweifellos ist, daß die Fettlöslichkeit der Stoffe in Hinsicht auf ihre narkotisierende Wirkung eine wichtige Bedingung vorstellt. Indessen ist selbstverständlich damit noch keine „Theorie der Narkose“ gegeben, die uns den Mechanismus der Narkose verständlich machte. Aber es ist wenigstens der Anfang gemacht in der Erkenntnis ihrer Bedingungen. Ferner verdient noch die Ansicht Beachtung, die sich auf die Untersuchungen von MEYER und OVERTON stützt, daß es das unzersetzte Molekül des Narcoticums ist, das die Wirkung hervorruft, nicht seine Zersetzungsprodukte. Das schließt z. B. OVERTON daraus, daß die Ester der Fettsäuren nur so lange narkotisierend wirken, als sie unverseift sind, daß sie dagegen mit ihrer Spaltung in den betreffenden Alkohol und die Fettsäure die Wirkung verlieren. Auch die Ansicht HÖBERs[384] beansprucht Interesse, daß bei der Narkose eine Zustandsänderung kolloidaler Stoffe der Zelle stattfindet. Freilich ist auch damit noch keine „Theorie der Narkose“ gegeben. Schließlich muß jede Theorie der Narkose mit folgenden experimentell festgestellten Tatsachen rechnen. WINTERSTEIN[385] hat am Zentralnervensystem und FRÖHLICH[386] am peripherischen Nerven nachgewiesen, daß während der Narkose keine Sauerstoffaufnahme stattfindet, selbst dann nicht, wenn das Sauerstoffbedürfnis der lebendigen Substanz durch Arbeitslähmung oder Einwirkung bis zu einem besonders hohen Grade gesteigert ist und wenn Sauerstoff während der Narkose in reichlicher Menge zur Verfügung steht. Trotzdem geht, wie HEATON in noch unveröffentlichten Versuchen zeigen konnte, der Zerfall der lebendigen Substanz während der Narkose weiter. Die Dissimilationsphase des Stoffwechsels wird nicht gelähmt durch das Narkotikum. Das geht daraus hervor, daß ein Nerv der dauernd in sauerstoffhaltiger Luft narkotisiert wird, wenn die Narkose schließlich in reinem Stickstoff aufgehoben ist, eine ebensolche Abnahme der Erregbarkeit zeigt, wie ein gleichzeitig ohne Narkose in reinem Stickstoff erstickter Nerv, und daß er sich wie dieser nur erholt, wenn ihm von neuem Sauerstoff zugeführt wird. Nach allen diesen und weiteren Erfahrungen wird also durch die Narkose der Sauerstoffwechsel der lebendigen Substanz gelähmt, während die Dissimilationsphase des Stoffwechsels von der Narkose unberührt bleibt, bis die lebendige Substanz erstickt.
Alle diese Tatsachen werden einst wichtige Bausteine für eine künftige Theorie der Narkose liefern, die uns bis jetzt noch fehlt.
2. Die Wirkungen osmotischer Reizung.
Wie bereits oben bemerkt, ist es mit großen Schwierigkeiten verbunden, die Wirkungen rein osmotischer Reize von denen spezifisch chemischer Reize zu differenzieren, denn wird in dem Medium, in dem ein Organismus lebt, also etwa im Wasser, der osmotische Druck durch Hinzufügen oder Herausnehmen eines osmotisch wirksamen Stoffes erhöht oder herabgesetzt, so ist das immer nur möglich dadurch, daß zugleich auch die Konzentration der chemischen Stoffe im Medium verändert wird, d. h. daß chemische Reize gesetzt werden. Die Schwierigkeit, die sich dadurch ergibt, liegt also darin, zu entscheiden, ob und wie weit die in einem solchen Falle beobachtete Reizwirkung auf die Rechnung des veränderten osmotischen Drucks oder auf Rechnung der spezifischen Konstitution des chemischen Stoffes zu setzen ist. Dennoch ist es möglich, auf Umwegen diese Frage zu entscheiden. Die ersten Experimente in dieser Richtung sind von MASSART[387] ausgeführt worden, der durch vergleichende Versuche mit verschieden konzentrierten Lösungen verschiedenartiger Stoffe zu dem Ergebnis gekommen ist, daß schon geringe Veränderungen im osmotischen Druck des Mediums bei einzelligen Organismen Erregungswirkungen hervorrufen. Indessen hat JENNINGS[388] bald darauf durch ähnliche Versuche wieder Einwände gegen die Deutung der MASSARTschen Befunde erhoben, wenn er auch die Wirkung osmotischer Druckveränderungen von größerem Umfange nicht bezweifelt. Leider ist seitdem die Frage noch nicht so systematisch studiert worden, daß wir bis heute schon klare Ergebnisse gewonnen hätten, und so müssen wir uns hier darauf beschränken, einige Tatsachen anzuführen, die mit einer gewissen Wahrscheinlichkeit als speziell osmotische Reizwirkungen betrachtet werden können.
a) Erregungswirkungen.
Nach allen bisherigen Erfahrungen können wir im allgemeinen sagen, daß jede Erhöhung des osmotischen Druckes der lebendigen Substanz, wie sie durch Wasserentziehung hervorgerufen wird, wenn sie sich innerhalb gewisser Grenzen hält, die Erregbarkeit der lebendigen Substanz steigert und, wenn sie plötzlich auftritt, sogar direkt Erregungswirkungen hervorruft. Wird z. B. einem Frosch von der Aorta aus das Zentralnervensystem mit einer 2–5-proz. Kochsalzlösung durchspült, so daß den Ganglienzellen stürmisch Wasser entzogen wird, so treten so heftige Erregungswirkungen[389] von seiten des Zentralnervensystems auf, daß sich der Frosch verhält, ähnlich als ob er mit Strychnin vergiftet wäre, einem Gift, das bekanntlich die Erregbarkeit der sensiblen Elemente des Rückenmarks ungeheuer steigert und heftige Krämpfe hervorruft. Durchspült man den Frosch nur kurze Zeit mit einer so stark wasserentziehenden Lösung, so weicht die Erregung sehr schnell einer vollständigen Lähmung und die Zentra sterben ab. Für die Muskeln gilt dasselbe. Hier hat OVERTON[390] gezeigt, daß es sich bei der allmählichen Lähmung und dem Absterben in diesem Fall nur um Wirkungen des osmotischen Druckes handelt, indem er die Muskeln in Lösungsgemische brachte, deren jede einzelne Komponente an sich chemisch völlig unwirksam war, wenn sie in einer dem Muskel isotonischen Lösung gegeben wurde. Eine sehr einfache Methode der Wasserentziehung ist schließlich das Eintrocknenlassen. Muskeln und Nerven vom Frosch, die man an der Luft liegen läßt, so daß sie allmählich durch Verdunstung einen steigenden Wasserverlust erleiden, werden sehr bald ungeheuer erregbar und können durch die schwächsten Reize in heftige Erregung versetzt werden. Erreicht der Wasserverlust eine bestimmte Grenze, so treten dadurch selbst bereits heftige Erregungswirkungen ein, der eintrocknende Muskel zeigt dauernd kurze Zuckungen und der eintrocknende Nerv entsendet fortwährend zu seinem Muskel heftige Impulse. Genau ebenso verhält sich der Nerv, wenn man ihm durch Aufstreuen von Kochsalz eine sehr rapide Wasserentziehung erzeugt.
b) Lähmungswirkungen.
Erhöht eine Wasserentziehung innerhalb gewisser Grenzen die Erregbarkeit der lebendigen Substanz, so setzt umgekehrt die Vermehrung des Wassergehalts ihre Erregbarkeit herab und ruft vollständige Lähmung hervor. Ein Muskel, den man in eine hypotonische Kochsalzlösung bringt, verliert allmählich seine Erregbarkeit und wird wasserstarr. In diesem Zustande ist er durch die stärksten Reize nicht mehr zu Kontraktionen zu veranlassen. Indessen ist es hier schon zweifelhaft, wieweit eine Verminderung des osmotischen Druckes in Frage kommt, denn man muß immer mit dem Faktor rechnen, daß bei Behandlung des Muskels mit Lösungen von sehr niedrigem osmotischen Druck, am meisten natürlich bei Behandlung mit destilliertem Wasser, ein Hinausdiffundieren von Stoffen aus dem Muskel in das umgebende Medium stattfinden kann, so daß dem Muskel Stoffe entzogen werden, die für die intakte Erhaltung seiner Erregbarkeit notwendig sind. Das ist besonders zu berücksichtigen, nachdem OVERTON (l. c.) nachgewiesen hat, daß die Entziehung von Kochsalz durch Diffusion den Muskel auch in sonst isotonischen Lösungen, z. B. in einer 6-proz. Rohrzuckerlösung, unerregbar macht, daß also das Kochsalz zur Erhaltung der Erregbarkeit im Muskel erforderlich ist.
Daß auch bei längerdauernder oder stärkerer Erhöhung des osmotischen Druckes die Erregung der lebendigen Substanz sehr bald in eine Lähmung übergeht, wurde oben schon gesagt.
2. Die Wirkungen mechanischer Reizung.
Als mechanische Reize können wir alle Veränderungen in den Druckverhältnissen bezeichnen, unter denen die lebendige Substanz in ihrer Umgebung steht. Davon sind die Wirkungen der Verminderung des Druckes bisher noch nicht genauer untersucht worden. Es kommen also für unsere Betrachtung ausschließlich die Wirkungen der Erhöhung des Druckes in Frage.
Die Erhöhung des Druckes kann in überaus mannigfaltigen Formen auftreten, von der leisen Berührung bis zum kräftigen Quetschen oder bis zum völligen Zerdrücken der lebendigen Substanz, vom kurzen Stoß bis zum kontinuierlichen und andauernden Druck, von der unregelmäßigen Erschütterung bis zu den rhythmisch-intermittierenden Stößen, wie sie die Stimmgabel erzeugt.
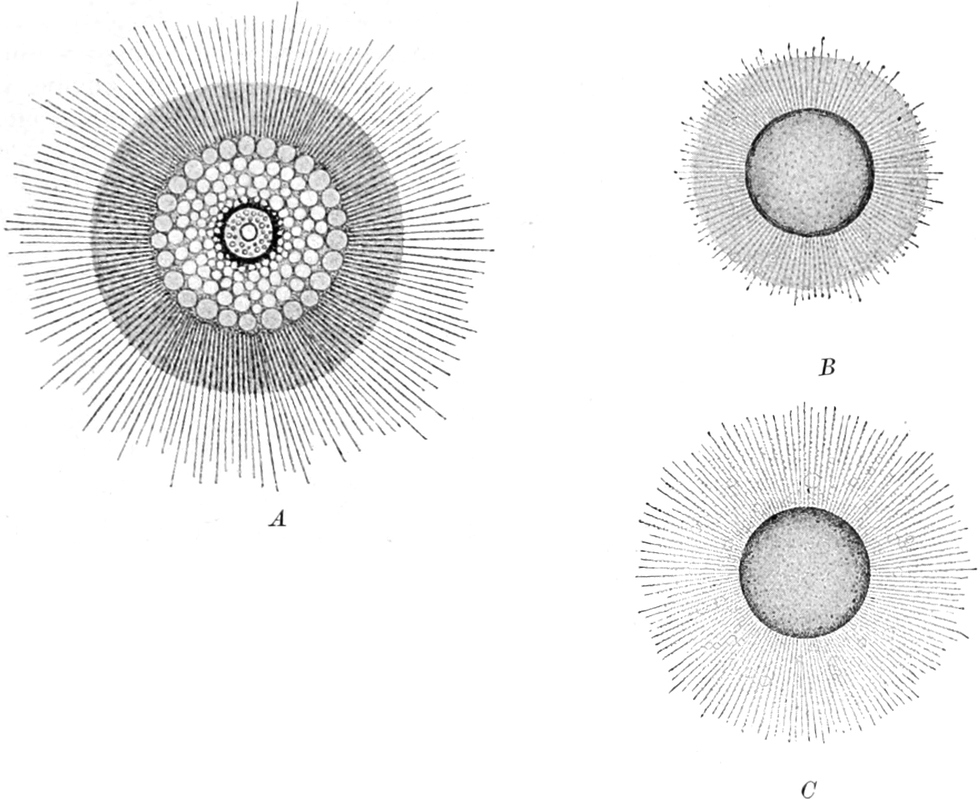
Fig. 187.
Thalassicolla nucleata, eine kugelförmige Radiolarienzelle
.
A
Unverletztes Individuum im Querschnitt. In der Mitte liegt die von schwarzem Pigment umgebene Zentralkapsel mit dem Zellkern.
B
Zentralkapsel herauspräpariert. Sie hat sich schon wieder mit einem neuen Pseudopodienkranz umgeben.
C
Dieselbe Zentralkapsel nach starker Reizung. Die Pseudopodien sind etwas eingezogen und zwischen ihnen ist eine dichte Schleimmasse sezerniert worden.
B
und
C
stärker vergr.
a) Erregungswirkungen.
Unter den erregenden Wirkungen der mechanischen Reize auf den Stoffwechsel können wir am deutlichsten die Erregung der Stoffproduktion, der Sekretion der einzelligen Organismen beobachten. Ein Actinosphaerium z. B., das in völliger Ruhe im Wasser schwebt, hat viele gerade, nach allen Richtungen hin ausgestreckte Pseudopodien, die von Sekret vollkommen frei sind. Letzteres geht daraus hervor, daß Wimperinfusorien aus der Gruppe der Hypotrichen, die nur an ihrer Bauchseite Wimpern tragen, mit denen sie wie Asseln auf Gegenständen im Wasser umherlaufen, nicht selten ungestört auf den gerade ausgestreckten Pseudopodien entlang promenieren, ohne auf ihnen festzukleben. Prallt dagegen ein solches Infusor einmal in heftiger Schwimmbewegung gerade an ein Pseudopodium an, so genügt dieser mechanische Reiz, um an der Berührungsstelle die Sekretion eines klebrigen Stoffes hervorzurufen, der das Infusor als Beute festhält[391]. Ebenso ruft ein einzelner starker Erschütterungsstoß die Schleimsekretion auf den Pseudopodien hervor, so daß kleine, im Wasser suspendierte Partikel daran kleben bleiben. Diese Schleimsekretion als Wirkung mechanischer Reizung ist bei den nackten Protoplasmakörpern der Rhizopoden weit verbreitet. Direkt sichtbar wird der Schleim z. B. bei dem großen, im Meere lebenden Radiolar Thalassicolla. Wenn man aus dem runden, erbsengroßen Körper der Thalassicolla die von äußerst feinen Poren durchbohrte Zentralkapsel mit ihrem Inhalt von Protoplasma und Zellkern ohne Verletzung exstirpiert hat, was mit geringer Mühe gelingt, dann fängt nach kurzer Zeit diese Zentralkapsel an, sich zu einem vollständigen Radiolar zu regenerieren, d. h. Pseudopodien, Gallert- und Vakuolenschicht neu zu bilden (vergl. Fig. 187). Nachdem die Pseudopodien wie ein Kranz von Sonnenstrahlen aus dem gelben Kugelkörper herausgetreten sind, bemerkt man zwischen ihnen einen äußerst feinen, noch überaus dünnflüssigen Schleim, der von den Pseudopodien ausgeschieden wird und die Anlage der neuen Gallertschicht repräsentiert. Erschüttert man in diesem Stadium das Radiolar durch starke Stöße, so sieht man, wie sich die dünne Schleimmasse vermehrt und zugleich fester und derber wird, was um so deutlicher zum Ausdruck kommt, je öfter die Erschütterung wiederholt wird[392]. Die mechanische Reizung befördert also die Schleimsekretion in sichtbarer Weise.
Erregende Wirkungen mechanischer Reize auf die Formbildungsvorgänge des Wachstums und der Teilung der Zellen sind bisher nicht bekannt geworden.
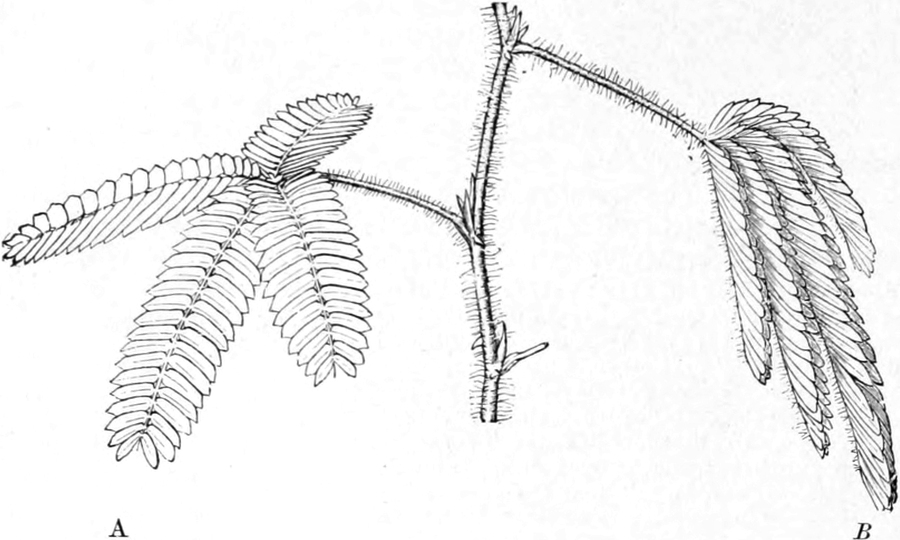
Fig. 188.
Mimosa pudica
.
A
Ein Zweig in ungereiztem Zustande ausgestreckt.
B
Ein Zweig in gereiztem Zustande gesenkt mit zusammengefalteten Blättern. Nach D
ETMER
.
Dagegen sind die erregenden Wirkungen auf den Energieumsatz sehr ausführlich untersucht worden, und es liegt ein großes, hier und dort zerstreutes Beobachtungsmaterial darüber vor, aus dem wir hier die typischen Fälle herausgreifen können.
Den Mittelpunkt des Interesses bilden auch hier wieder die Bewegungsvorgänge, die durch mechanische Reize ausgelöst werden. Allgemein bekannt ist die Auslösung der Turgeszenzbewegungen an den sogenannten sensitiven Pflanzen, wie etwa an der zierlichen Mimosa pudica. Die einem kleinen Akazienbäumchen ähnliche Mimose hält am Tage und in ungestörtem Zustande ihre Blattstiele erster Ordnung, die vom Stamme entspringen, schräg nach oben gerichtet. Die Blattstiele zweiter Ordnung, welche die Blätterreihen tragen, sind weit auseinandergespreizt, und die Blättchen selbst stehen horizontal weit ausgebreitet (Fig. 188 A). Sobald aber der Topf, in dem das Bäumchen wächst, einen Erschütterungsstoß erfährt, ändert sich das Bild fast momentan. Die Blattstiele erster Ordnung sinken infolge der Abnahme des Turgors ihrer Basalpolsterzellen schlaff nach unten, die Blattstiele zweiter Ordnung wenden sich näher aneinander, und die Blättchen selbst erheben sich und legen sich mit ihren oberen Flächen zusammen (Fig. 188 B). In dieser Stellung verharrt die Pflanze, wenn sie ferner in Ruhe gelassen wird, einige Zeit und kehrt dann ganz allmählich, indem der Zellturgor an den betreffenden Stellen der Gelenkpolster wieder steigt, in ihre ursprüngliche Stellung zurück. Auch an einem einzigen Blättchen kann man durch ganz sanfte lokale Berührung die Reizstellung auslösen. Berührt man zu stark, so sieht man die folgenden Blätter nacheinander wie eine Reihe Zinnsoldaten umklappen und hat daran einen überaus augenfälligen Ausdruck für die Fortpflanzung der Erregung in der Sinnpflanze.
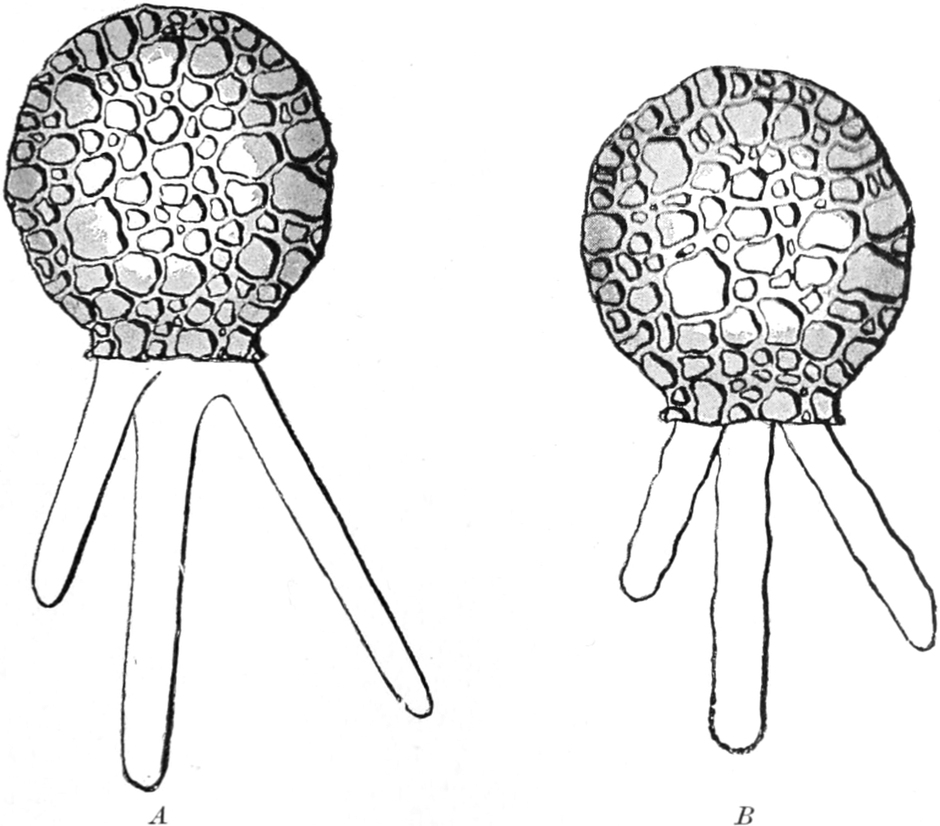
Fig. 189.
Difflugia
. Aus dem Sandgehäuse ragen drei fingerförmige Pseudopodien hervor.
A
ungereizt,
B
gereizt durch eine schwache Erschütterung.
Unter den Kontraktionsbewegungen kennen wir als Wirkung mechanischer Reize mit Sicherheit bisher nur die Auslösung des Kontraktionsstadiums, obwohl es nicht unwahrscheinlich ist, daß sehr feine Berührungsreize, wie z. B. der Kontakt einer amöboiden Protoplasmamasse mit ihrer glatten Unterlage, durch Kohäsionswirkung in manchen Fällen auch die Expansion der Pseudopodien beeinflussen könnten.
Bei den nackten Protoplasmakörpern der Rhizopoden bringt an den ausgestreckten Pseudopodien ein einzelner Erschütterungsstoß, wie er etwa durch einen starken Schlag auf den Objektträger unter dem Mikroskop erzeugt werden kann, je nach dem sehr verschiedenen Grade ihrer Reizbarkeit, mehr oder weniger starke Kontraktionsbewegungen hervor[393]. Eine Amöbe, ein Actinosphaerium etc., die in dieser Weise gereizt werden, sistieren ihre zentrifugale Protoplasmaströmung, d. h. die Ausstreckung ihrer Pseudopodien, momentan, bei starker Reizung kann sogar eine teilweise Einziehung der Pseudopodien, eine vorübergehend zentripetale Protoplasmaströmung eintreten. Andere Formen dagegen, wie die mit zierlichem, aus Sandkörnchen gebautem Gehäuse versehenen Difflugien (Fig. 189), reagieren energisch auf die mechanische Reizung. Schon bei einer schwachen Erschütterung werden die Pseudopodien langsam mehr oder weniger weit retrahiert, wobei ihr vorher glatter Kontur runzelig wird (Fig. 189 B). Bei stärkerer Erschütterung aber werden die Pseudopodien häufig mit solcher Gewalt in den Protoplasmaleib hineingezogen, daß ihre Enden, da das Protist durch ein klebriges Sekret an seiner Unterlage festhaftet, infolge des energischen Zuges abreißen. Bei stärkerer Reizung macht sich gleichzeitig die Veränderung, welche die Pseudopodien erfahren, noch in viel ausgeprägterem Maße geltend als bei der schwächeren: die Pseudopodien werden nicht bloß runzelig, sondern es quellen aus ihrer ganzen Oberfläche über den glatten Kontur hinaus kleine Tröpfchen hervor[394], die, je weiter die Reizwirkung sich entwickelt, um so größer werden, zu einer Masse von myelinartigem Aussehen zusammenfließen und sich deutlich von einem stark lichtbrechenden, in der Achse des Pseudopodiums sichtbar werdenden Strangs sondern (Fig. 190), bis das Pseudopodium ganz eingezogen ist und seine Masse mit dem übrigen Körperprotoplasma vermischt. Auch unter den Polythalamien der See finden sich viele Formen mit sehr großer Reizbarkeit, die schon auf einen einzigen Erschütterungsstoß hin ihr ganzes reich verzweigtes Pseudopodiennetzwerk einziehen.
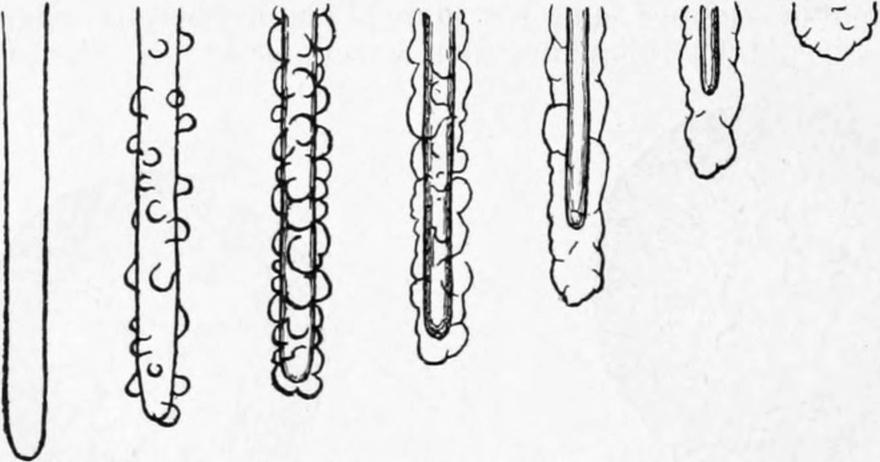
Fig. 190.
Kontraktion eines Pseudopodiums von Difflugia lobostoma nach starker Erschütterung
. Sieben aufeinanderfolgende Stadien der Retraktion.
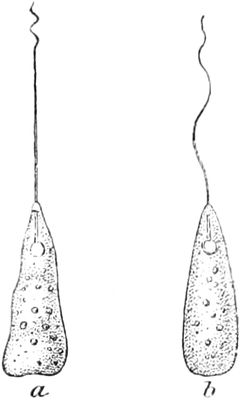
Fig. 191.
Peranema, eine Geißelinfusorienzelle
.
a
Ungestört schwimmend,
b
durch Erschütterung gereizt.
In der gleichen Weise kann man auf dem Objektträger unter dem Mikroskop die Wirkungen eines Erschütterungsstoßes auf die Geißel- und Wimperbewegung beobachten. Verfolgen wir z. B. eine Peranema unter dem Mikroskop auf ihrem Wege, so finden wir, daß dieses kleine Infusorium lediglich durch die regelmäßigen Peitschenschwingungen seines vorderen Geißelendes gerade und ungestört sich durch das Wasser bewegt (Fig. 191). Führen wir aber jetzt einen kurzen Schlag auf den Objektträger aus, so erfolgt sogleich ein energischer Peitschenschlag der ganzen Geißel, der dem Flagellat eine andere Bewegungsrichtung gibt. Darauf setzt es wie vorher ruhig, nur das Ende seiner Geißel schwingend, seinen Weg wieder fort. Der mechanische Reiz hat also eine Verstärkung des Geißelschlages zur Folge gehabt. Dasselbe können wir bei der Flimmerbewegung der Wimperinfusorien beobachten. Folgen wir unter dem Mikroskop einem recht ruhig und nicht zu schnell dahinschwimmenden Paramaecium, das sich durch das Spiel seiner Wimpern wie durch unzählige kleine und schnell schlagende Ruder durch das Wasser bewegt, so sehen wir, wie es auf einen Erschütterungsstoß hin seine Bewegung plötzlich beschleunigt, um aber sofort wieder zu seiner vorhergehenden Geschwindigkeit zurückzukehren. Viel deutlicher aber ist diese Wirkung bei Pleuronema chrysalis zu beobachten, einem kleinen bohnenförmigen Infusor, das in der Regel lange Zeit ganz still im Wasser liegt und seine langen, strahlenförmigen Wimpern vollkommen ruhig hält (Fig. 192), im Moment einer geringen Erschütterung aber plötzlich eine oder einige wenige, sehr energische Schläge mit den Wimpern ausführt, so daß es einem Floh ähnlich durch das Wasser springt, um gleich darauf wieder an einem anderen Orte ruhig liegen zu bleiben. Aehnliche Fälle gibt es in der sanguinischen Infusorienwelt in großer Fülle. Weit und breit finden wir, daß mechanische Reize energische Wimperschläge auslösen.
Auch um die Wirkungen mechanischer Reize auf die Muskelbewegung zu beobachten, bietet das Infusorienleben unzählige Gelegenheiten. Die glatten Muskelfäden (Myoide) sind unter den Infusorien weit verbreitete Organoide, und wie überhaupt alles im Leben dieser in ewiger Bewegung befindlichen Protisten mit großer Schnelligkeit geschieht, so reagieren auch die kontraktilen Fäden auf die geringste Erschütterung mit einer plötzlichen, heftigen Kontraktion. Es gibt wenige Anblicke in der mikroskopischen Welt, die so anmutig und fesselnd sind wie das Zusammenzucken eines weitverzweigten Vorticellinenbäumchens nach jeder kleinen Erschütterung (Fig. 193). Im Moment des Stoßes kontrahieren sich gleichzeitig und blitzschnell die sämtlichen Stielmyoide der einzelnen Individuen, und die Stiele legen sich in zierliche Sprungfedertouren (Fig. 193 B). Auch Stentor, der in der Ruhe seine schöne Trompetenform entfaltet hat, zuckt durch die Kontraktion seiner vielen, in der äußeren Körperschicht gelegenen Myoidfäden auf jede Erschütterung plötzlich zu einer gestielten Kugel zusammen (Fig. 183 p. 439). Ebenso verhalten sich die quergestreiften Muskeln der höheren Tiere, ohne freilich den gleichen hohen Grad der Reizbarkeit zu besitzen. Es bedarf schon eines stärkeren Schlages auf die Muskelsubstanz selbst, um z. B. einen Froschmuskel durch mechanische Reizung zum Zucken zu bringen.
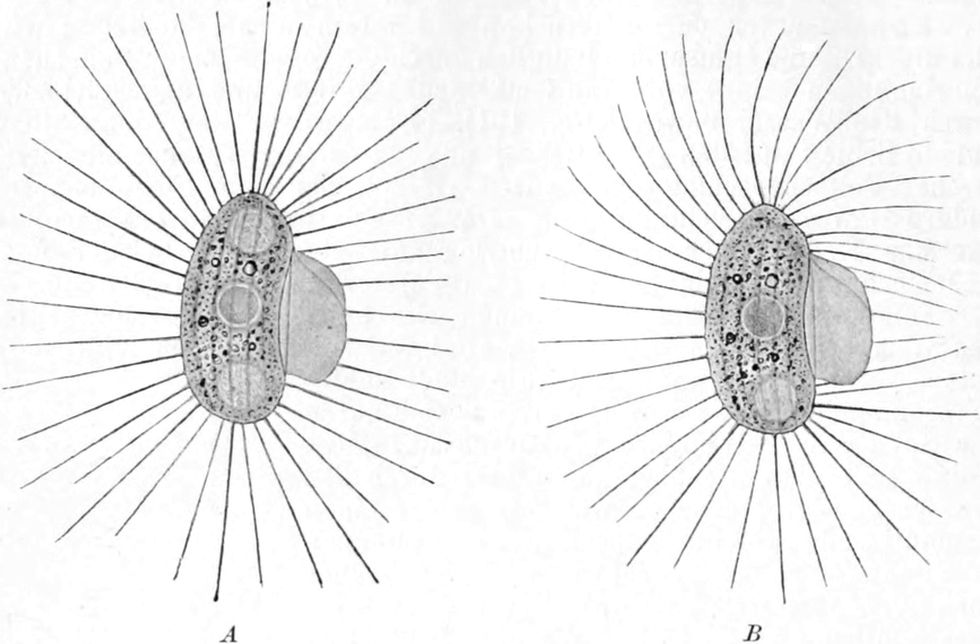
Fig. 192.
Pleuronema chrysalis
.
A
Stillliegend,
B
im Begriff, auf einen Erschütterungsreiz zu springen. Die Wimpern sind im Schlag begriffen.
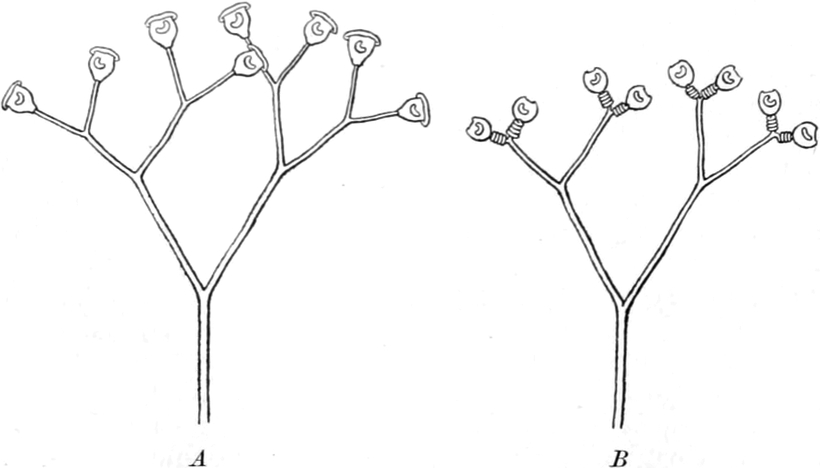
Fig. 193.
Carchesium polypinum, eine verzweigte Vorticellinen-Kolonie
.
A
Ungereizt,
B
durch Erschütterung gereizt. Die einzelnen Individuen sind durch Kontraktion ihrer Stielmyoide zusammengeschnellt.
Die Erregung der Lichtproduktion durch mechanische Reize ist jedem bekannt, der eine Reihe schöner, ruhiger Sommernächte am Meer verbracht hat. Die eigenartige glashelle Tierwelt, die bei ruhigem Wetter die oberflächlichen Schichten des Meeres belebt, hat, gleichgültig, welchen Tierklassen ihre verschiedenen Mitglieder angehören, die wundervolle Fähigkeit, bei jedem Schaukeln des Bootes, bei jeder Ruderbewegung, bei jedem Wellenschlag hell aufzuleuchten. Wo viele kleine Organismen, wie Noktiluken, Radiolarien, Ctenophoreneier etc., im Meere als Plankton treiben, kann man sich den physiologischen Genuß eines magischen Funkensprühens im Wasser des Abends sogar im Zimmer verschaffen. Bei jedem Umrühren des Meerwassers im Glase blitzen diese einzelligen Wesen im Moment der Berührung mit dem Glasstabe hell auf, um sofort wieder in Dunkelheit zu versinken. Hundertfach sprühen die Funken im Glase und bieten einen ästhetischen Anblick von solcher Schönheit, daß selbst das so viel geschmähte „verhärtete Gemüt“ des Vivisektors davon nicht unberührt bleibt.
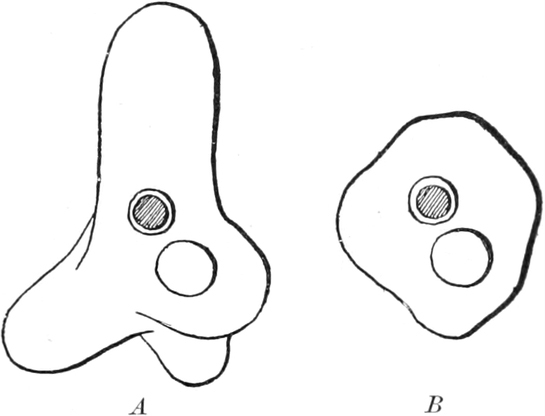
Fig. 194.
Amöbe
.
A
Normal,
B
nach tetanischer Reizung auf der Stimmgabel.
Ehe wir uns von der Betrachtung der erregenden Wirkungen mechanischer Reize abwenden, verdient noch eine Gruppe von Reizwirkungen unsere Aufmerksamkeit; das sind die Folgen rhythmisch sich wiederholender Erschütterungen. Hierbei kommen die Wirkungen, die bei einmaliger Erschütterung sich nur unvollkommen entwickeln, durch Summation in ihrem stärksten Grade zum Ausdruck, vorausgesetzt, daß die einzelnen Erschütterungsstöße einander folgen, ehe der Reizerfolg jedes einzelnen schon wieder vorübergegangen ist. Am deutlichsten ausgesprochen finden wir diese Tatsache bei den Kontraktionsbewegungen, bei denen sich eine Kontraktion über die andere „superponiert“, so daß gar keine Expansion dazwischen Zeit hat, sich zu entwickeln, sondern ein vollständiger Kontraktionskrampf entsteht, den wir als „mechanischen Tetanus“ bezeichnen. Die Eigentümlichkeit des Tetanus besteht darin, daß er, obwohl distinuierlich aus lauter einzelnen Kontraktionen zusammengesetzt, doch wegen der schnellen Aufeinanderfolge derselben den Eindruck eines kontinuierlichen Vorganges macht und infolge der Summation der Einzelkontraktionen zugleich eine viel stärkere Kontraktion zum Ausdruck bringt, als sie bei einer Einzelreizung zur Entwicklung kommt. Die einfachste Methode, um rhythmische Erschütterungen zu erzeugen, ist die, daß man die Objekte entweder in einem flachen Näpfchen durch ein rotierendes Zahnrad mit weiten Speichen erschüttert oder auf einem dünnen Glasplättchen an dem eines Zinken einer Stimmgabel von geeigneter Tonhöhe befestigt und den anderen Zinken mit einem Geigenbogen anstreicht. Die sofort im Moment der Beendigung des Versuches angestellte Beobachtung zeigt dann, daß Amöben, Actinosphaerium und andere Rhizopoden ihre Pseudopodien vollständig eingezogen haben und sich im Stadium stärkster Kontraktion, d. h. in mehr oder weniger vollkommener Kugelform, befinden (Fig. 194). Unterbricht man den Versuch schon nach kurzer Dauer der Erschütterung, so kann man, je nach dem Zeitpunkt der Unterbrechung, die verschiedenen Stadien der Entwicklung des Tetanus beobachten. Die Pseudopodien sind dann erst unvollkommen eingezogen. Charakteristisch sind dabei die Veränderungen an langen, fadenförmigen Pseudopodien, z. B. des Actinosphaerium oder Orbitolites (Fig. 195 u. 196). Bei ganz schwachen Erschütterungsstößen bleiben hier die Pseudopodienfäden glatt und gerade, wie sie im ungestörten Zustande waren, und ihr Protoplasma fließt langsam, aber stetig ausnahmslos in zentripetaler Richtung. Sind die Erschütterungsstöße aber heftiger, dann nehmen die vorher glatten Pseudopodien ein variköses Aussehen an, indem das zentripetal strömende Protoplasma derselben sich zu lauter kleinen Spindelchen und Kügelchen sammelt, von denen die kleineren in die nächstliegenden größeren hineinfließen, die größeren sich immer mehr dem zentralen Protoplasmakörper nähern, bis schließlich nach längerer Dauer der Einwirkung alles Protoplasma in den Zellkörper selbst hineingeflossen ist[395]. Die eigentümliche Tröpfchenbildung auf den Pseudopodien ist eine bei den mit fadenförmigen Pseudopodien versehenen Rhizopoden allgemein verbreitete Eigentümlichkeit des stark und dauernd gereizten Protoplasmas, die nur ein spezieller Fall der allgemeinen Tatsache ist, daß stärkere Reize nackte Protoplasmamassen zur Annahme der Kugelform veranlassen. Dasselbe Bestreben der Kugelbildung, das alles gereizte Protoplasma als Ganzes zeigt, macht sich auch in seinen einzelnen Teilen bemerkbar[396].
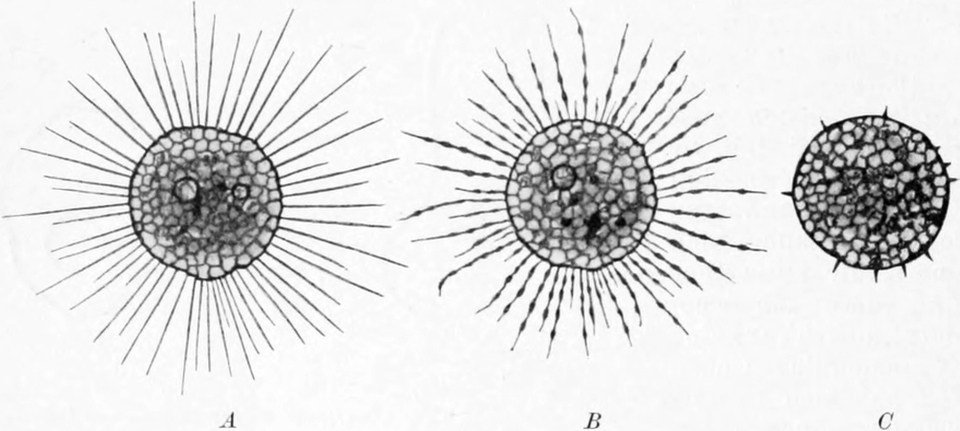
Fig. 195.
Actinosphaerium
.
A
Ungestört,
B
im Beginn stärkerer tetanischer Reizung,
C
im vollkommenen mechanischen Tetanus.
Die Flimmerbewegung wird durch rhythmisch intermittierende Erschütterungen zu großer Energie gesteigert, so daß Infusorien, die auf diese Weise gereizt sind, noch eine beträchtliche Zeitlang nach der Reizung wie rasend durch das Wasser stürmen. Zur Entwicklung eines wirklichen Tetanus, bei dem die Wimpern in Kontraktionsstellung gekrümmt stehen blieben, scheint es indessen hier nicht zu kommen, wenigstens sind solche Beobachtungen bis jetzt noch nicht gemacht worden. Die rhythmische Bewegung der Flimmerhaare bleibt dauernd bestehen und wird nur in ihrer Geschwindigkeit und Amplitude verändert.
Dagegen können wir beim Muskel sehr leicht einen mechanischen Tetanus erzeugen. Vorticellen, in der oben beschriebenen Weise gereizt, verfallen sofort in Tetanus. Der Stielmuskel bleibt dauernd kontrahiert. Ja, der Tetanus ist häufig so stark, daß sich die Zellkörper der Vorticellen von den Stielen ablösen und frei durch das Wasser davonschwimmen. Kurze Zeit nach dem Aufhören der Reizung strecken sich dann die isolierten Stiele wieder, bleiben aber selten noch einige Zeit am Leben.