Drittes Kapitel. Von den elementaren Lebensäußerungen. (continued 2)
Reading edition
Schließlich könnte man als Sekrete im weitesten Sinne auch die in der Zelle produzierten Stoffe, wie Stärke, Aleuronkörner, Fetttröpfchen etc., auffassen, die in der Zelle als Reservestoffe eine Zeitlang aufgespeichert, später im Stoffwechsel wieder verbraucht werden.
Zu den Sekreten, die nach ihrer Produktion dauernd im Organismus bleiben, gehören fast ausschließlich die Pigmente und die skelettbildenden Substanzen. Während die Pigmente, die meist in Form feiner Körnchen auftreten, stets im Zellkörper bleiben und besonders beim Farbenwechsel der Tiere eine noch nicht ganz aufgeklärte Bedeutung für das Tier besitzen, wird die überwiegende Mehrzahl der skelettbildenden Substanzen nach außen abgeschieden, sei es, daß sie in der Zelle selbst angelegt und später ausgestoßen werden, wie die Kalknadeln und Plättchen der Holothurien, sei es, daß sie gleich als Membranen, Schalen, Panzer an der Oberfläche der Zellen abgesondert werden, wie die Zellmembranen, die Zellulosemembranen der Pflanzenzellen, die Chitinpanzer der Insekten, die Kieselsäureschalen der Diatomeen, die überaus zierlichen Gitterskelette der Radiolarien (Fig. 76), die Kalkgehäuse der Foraminiferen etc., sei es endlich, daß sie in den Geweben zwischen den einzelnen Zellen abgelagert werden als sogenannte „Bindesubstanzen“, wie das Chondrin im Knorpel, das Kollagen im Knochen, der phosphorsaure Kalk im Knochen und die ganze Fülle der Stütz- und Gerüstsubstanzen, die in die Gruppe der Albuminoide gehören und bei den verschiedenen Tiergruppen verschiedenartige, noch wenig gekannte Zusammensetzung haben.
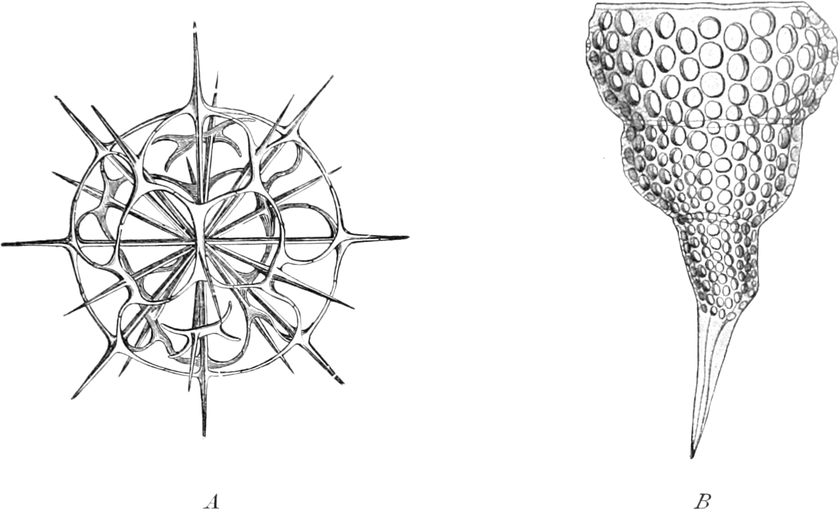
Fig. 76.
Kieselskelette
von Radiolarien nach H
AECKEL
.
A
Dorataspis
.
B
Theoconus
.
b) Exkrete.
Die Exkrete sind weit weniger mannigfaltig als die Sekrete. Die Hauptrolle unter ihnen spielen die Stoffe der regressiven Eiweißmetamorphose, die von jeder lebendigen Substanz ausgeschieden werden.
Unter den gasförmigen Exkreten ist das wichtigste die Kohlensäure, das Endprodukt der Atmung, das zum größten Teil aus dem oxydativen Zerfall der Eiweißverbindungen, Kohlehydrate und Fette der lebendigen Substanz hervorgeht, zum Teil aber auch aus Gärungsprozessen herrührt, denen diese Stoffe im Stoffwechsel unterliegen. Neben der Kohlensäure scheiden, wie wir bereits sahen, die Pflanzen noch Sauerstoff aus, der aus der Spaltung der von den grünen Pflanzenteilen aufgenommenen Kohlensäure stammt. Man hat daher den bereits früher berührten vermeintlichen Gegensatz im Stoffwechsel von Pflanzen und Tieren auch darin zu finden geglaubt, daß die Pflanzen Kohlensäure aufnehmen und Sauerstoff abgeben, während die Tiere bei der Atmung umgekehrt Sauerstoff aufnehmen und Kohlensäure ausscheiden. Allein spätere Untersuchungen haben gezeigt, daß auch dieser Gegensatz zwischen beiden Organismenreihen in Wirklichkeit gar nicht besteht. Zwar ist es wahr, daß die Tiere mit Ausnahme der Anaerobien sämtlich Sauerstoff einatmen, zur Verbrennung der lebendigen Substanz verwerten und als Verbrennungsprodukt dafür Kohlensäure ausatmen. Aber auch die Pflanzen tun dasselbe. Bei ihnen ist dieser fundamentale Lebensvorgang der Atmung nur verdeckt durch den Verbrauch und die Spaltung der Kohlensäure, die aber mit dem speziellen Vorgang der Atmung selbst nichts zu tun hat, sondern lediglich mit dem Aufbau der ersten organischen Substanz der Pflanze aus anorganischen Stoffen in Beziehung steht. Untersucht man daher den Stoffwechsel der Pflanze zu einer Zeit, wo keine Stärkebildung vor sich geht, wo keine Kohlensäurespaltung stattfindet, wo aber das Leben der Pflanze in anderen Vorgängen zum Ausdruck kommt, also im Dunkeln, so findet man bei gasanalytischen Versuchen, die den früher beschriebenen analog sind, daß die Pflanze genau in derselben Weise Sauerstoff verbraucht wie das Tier und genau so Kohlensäure dafür ausatmet wie das Tier. Der Prozeß der Atmung bei der Pflanze ist also nicht zu verwechseln mit dem Prozeß der Stärkeassimilation, der eine Aufnahme und Spaltung der Kohlensäure und Abscheidung von Sauerstoff verlangt und so den Prozeß der Atmung, der stets daneben existiert, nur verhüllt.
Unter den flüssigen Exkreten finden wir überall das Wasser und eine Anzahl im Wasser gelöster Stoffe. Da die einzelne Zelle bei ihrer Kleinheit zu geringe Mengen von allen diesen Exkretstoffen abgibt, so ist es bei dem jetzigen Stande der mikrochemischen Reaktionen zum größten Teil noch nicht möglich, diese Stoffe für jede einzelne Zelle nachzuweisen; wir müssen uns also, um sie kennen zu lernen, an den zusammengesetzten Zellenstaat halten. Bei der Pflanze wird das Wasser während der „Transpiration“ durch die sogenannten Spaltöffnungen der Blätter ausgeschieden und verdunstet. Durch die Tätigkeit besonderer Schließzellen können die Spaltöffnungen geschlossen und geöffnet und es kann dadurch die Abgabe des Wassers von seiten der Pflanze in feinster Weise geregelt werden. Bei den Tieren sind es besondere Drüsen, die Lungen, die Nieren und die Schweißdrüsen, deren Zellen das Wasser aus den Körpersäften ausscheiden und nach außen befördern.
Unter den stickstofffreien Produkten des Eiweißumsatzes sind die meisten vollständig bis zu Kohlensäure und Wasser oxydiert, so daß als Endprodukte fast ausschließlich Kohlensäure und Wasser den Körper verlassen. Allein es treten dabei doch auch Zwischenprodukte auf, die, von gewissen Zellen ausgeschieden, im Körper selbst noch ein anderes Schicksal haben. Das gilt besonders von der Milchsäure, die unter anderem von den Muskelzellen in das Blut ausgeschieden wird und sich noch im Blute findet, aber nicht als solche im Harn den Körper verläßt. Daß die Fleischmilchsäure oder Paramilchsäure aus dem Zerfall von Eiweißkörpern stammt und nicht etwa aus den aufgenommenen Kohlehydraten, geht aus den bereits angeführten Versuchen von GAGLIO[151] hervor.
Die stickstoffhaltigen Produkte des Eiweißumsatzes sind die bekannten Stoffe, denen wir schon mehrfach begegnet sind, vor allem Harnstoff, Harnsäure, Hippursäure, Kreatin etc., ferner die Nukleinbasen Xanthin, Hypoxanthin oder Sarkin, Adenin und Guanin, die zum größten Teil von den Nieren im Harn ausgeschieden werden und die Stoffe repräsentieren, in denen, abgesehen von einer unbedeutenden, im Schweiße und den Faeces enthaltenen Menge, der ganze in der Nahrung aufgenommene Stickstoff den Körper wieder verläßt.
Die letztere Tatsache, daß mit Ausnahme der verschwindenden Menge im Schweiße und den Faeces der sämtliche Stickstoff im Harn ausgeschieden wird, hat im Hinblick auf den Umstand, daß die Eiweißkörper und ihre Derivate die einzigen stickstoffhaltigen Stoffe im Organismus sind, eine sehr große Bedeutung in der Physiologie der tierischen Organismen erlangt; aber leider hat sie auch zu einem Fehlschluß geführt, der an sich vielleicht keinen unmittelbaren Einfluß auf die Entwicklung unserer grundlegenden physiologischen Vorstellungen gehabt hätte, wenn nicht auf ihn weitgehende und wichtige Folgerungen aufgebaut worden wären. Aus der eben genannten Tatsache ergibt sich nämlich mit Notwendigkeit zwar, daß der sämtliche im Harn ausgeschiedene Stickstoff aus dem Zerfall von Eiweißkörpern oder deren Verbindungen stammen muß, aber nicht der Schluß, den man noch weiterhin ziehen zu müssen glaubte, daß der im Harn ausgeschiedene Stickstoff ein Maß für den Eiweißumsatz im Körper abgibt. Der letztere Schluß wäre nur berechtigt, wenn man wüßte, daß alle stickstoffhaltigen Spaltungsprodukte des Eiweißes ausnahmslos den Körper verlassen. Dafür hat man aber durchaus keinen Anhaltspunkt; im Gegenteil, es ist, um hier nur die Möglichkeit zu berühren, durchaus keine Tatsache vorhanden, die dagegen spräche, daß sich stickstoffhaltige Spaltungsprodukte der Eiweißkörper oder ihrer Verbindungen mit neuen stickstofffreien Atomgruppen wieder zu Körpern der Eiweißgruppe synthetisch regenerieren können. Diese letztere Möglichkeit hat man übersehen, und infolgedessen ist man besonders in bezug auf den Stoffumsatz im Muskel früher vielfach zu Anschauungen gekommen, die in ihrer Einseitigkeit nicht zutreffend waren.
Den Exkretstoffen der regressiven Eiweißmetamorphose können wir noch eine Gruppe von Stoffen anreihen, die ebenfalls aus der Umformung von Körpern der Eiweißgruppe hervorgehen, und zwar hauptsächlich im Stoffwechsel der Bakterien. Das sind die sogenannten Ptomaine und die wegen ihrer sehr giftigen Wirkung als Toxine bezeichneten Stoffe. Auf ihrer giftigen Wirkung beruhen zum größten Teil die schweren Erkrankungen bei den durch Bakterieninfektion erzeugten Infektionskrankheiten, wie Cholera, Dysenterie, Diphtherie, Typhus etc. Die chemische Zusammensetzung dieser Stoffe ist erst in neuerer Zeit ein wenig bekannt geworden, vor allem durch die umfangreichen und tiefgehenden Arbeiten von BRIEGER[152]. Einige unter ihnen, die zuerst aufgefundenen Ptomaine, die bei Fäulnis von Eiweißsubstanzen, z. B. in Leichen, durch den Stoffwechsel der Fäulnisbakterien erzeugt werden, sind stickstoffhaltige Basen, welche den sogenannten Alkaloiden oder Pflanzenbasen, die im Pflanzenkörper entstehen und ebenfalls überaus giftige Exkretstoffe repräsentieren, verwandt sind.
Schließlich ist hier der Ort, um mit einigen Worten noch auf eine sehr interessante Reihe von Stoffen einzugehen, die gleichfalls hauptsächlich durch den Stoffwechsel der Bakterien, aber auch vieler anderer Zellen erzeugt werden und erst in neuester Zeit die Aufmerksamkeit der Forscher auf sich gelenkt haben. Das sind die Toxalbumine, giftige Eiweißkörper, die in dem Stoffwechsel der betreffenden Zellen durch Umformung aus anderen Körpern gebildet werden und in der Pathologie der Infektionskrankheiten eine wichtige Rolle spielen. Diese Toxalbumine sind hauptsächlich Körper aus den Gruppen der Globuline und der Albumosen. So ist z. B. der wirksame Bestandteil des seinerzeit von KOCH aus den Stoffwechselprodukten der Tuberkelbacillen gewonnenen „Tuberkulins“ eine Toxalbumose, die schon in geringen Dosen äußerst giftig wirkt. Durch Produktion einer anderen Toxalbumose rufen die Diphtheriebacillen ihre sehr charakteristischen Vergiftungssymptome im Körper diphtheriekranker Personen hervor, die oft nur sehr langsam wieder verschwinden. Die Toxalbumose der Diphtheriebakterien war der erste Toxalbuminkörper, der von LÖFFLER[153] als solcher erkannt und von BRIEGER und FRÄNKEL[154] rein dargestellt wurde. Man war nicht wenig erstaunt, als man die ersten giftigen Eiweißkörper kennen lernte, nachdem man so lange die Eiweißkörper stets nur als unschädliche, ja sogar als unbedingt zum Leben notwendige Nahrungsstoffe gekannt hatte. Und nicht geringer war die Verwunderung, als man später fand, daß die giftige Wirkung des gefürchteten Schlangengiftes, des Blutes mancher Fische, wie der Muränen etc., ebenfalls auf die Anwesenheit solcher Toxalbumine zurückzuführen ist, die hier durch den Stoffwechsel der Gewebezellen erzeugt und ausgeschieden werden.
Feste Exkretstoffe schließlich finden wir fast nur bei den Zellen, die geformte Nahrung aufnehmen. Bei ihnen werden die unverdaulichen Reste der Nahrung als feste Exkrete in der bereits beschriebenen Weise nach außen abgegeben. Nur in wenigen Fällen werden Exkretstoffe, die sich gelöst im Zellinhalt befinden, in der Zelle selbst zu festen Konkrementen geformt und dann ausgestoßen, wie es z. B. nach den Untersuchungen von RHUMBLER[155] bei Wimperinfusorien vorkommt. Ob man die Konkremente von Guanin und die Kristalle von Guaninkalk, die in manchen Zellen angehäuft und dauernd im Protoplasma abgelagert werden, wie die schön irisierenden Kristallplättchen und Nadeln in den Epidermiszellen der Amphibien und Fische, als Exkrete aufzufassen hat oder nicht vielmehr als Stoffe, die im Leben der betreffenden Organismen eine besondere Bedeutung haben, ist zur Zeit noch nicht zu entscheiden.
** *
Blicken wir noch einmal zurück auf die Tatsachen des Stoffwechsels, und vereinigen wir die einzelnen Erfahrungen zu einem Gesamtbilde, so finden wir, daß der Stoffwechsel vom Eintritt der Stoffe in die lebendige Zelle bis zum Austritt aus dieser in einer langen Reihe von komplizierten chemischen Prozessen besteht, die wir uns unter dem Bilde einer Kurve mit einem aufsteigenden und einem absteigenden Schenkel vorstellen können. Der aufsteigende Schenkel enthält als Glieder alle Prozesse, die zum Aufbau der lebendigen Substanz führen; der Höhepunkt wird gebildet von der Synthese der höchstkomplizierten organischen Stoffe, der Eiweißkörper und ihrer Verbindungen, der absteigende Schenkel umfaßt die Prozesse des Zerfalls der lebendigen Substanz bis in ihre einfachsten Spaltungsprodukte. Ausgangspunkt und Endpunkt der Kurve, d. h. die Stoffe, die in den Organismus eintreten und aus ihm austreten, sind am besten bekannt, am wenigsten dagegen und zum größten Teil sogar überhaupt nicht die Glieder der Stoffwechselkurve, die um den Höhepunkt liegen. Der gesamte Stoffwechsel aber ist ein ungeheuer kompliziertes Getriebe einer vorläufig noch ganz unabsehbaren Zahl von einzelnen chemischen Prozessen, die alle in ganz bestimmter Weise ineinander greifen und voneinander in engster Abhängigkeit stehen.
Die grüne Pflanzenzelle, ja schon die einfache, einzellige, grüne Alge, z. B. ein Protococcus, stellt ein chemisches Laboratorium vor, in dem aus den einfachsten anorganischen Stoffen, Kohlensäure, Wasser und Salzen, organische Substanz hergestellt wird, wobei Spaltungen und Synthesen immer Hand in Hand laufen. Zuerst entstehen Kohlehydrate. Die Kohlehydrate dienen wieder dazu, um unter Mitwirkung der stickstoffhaltigen Salze Eiweißkörper und deren Verbindungen aufzubauen, wobei die verschiedenartigsten Nebenprodukte entstehen. Diesen allmählichen Aufbau der Eiweißkörper aus ihren Verbindungen vollzieht die grüne Pflanzenzelle aber nicht allein für sich selbst, sie tut es zugleich für sämtliche tierische Zellen mit, welche die Fähigkeit, aus anorganischem Material organisches zu machen, im Laufe der Entwicklung verloren haben. Die von der Pflanze produzierten organischen Stoffe dienen den Pflanzenfressern, das Fleisch der Pflanzenfresser den Fleischfressern als Nahrung. Fleischfresser können aber allein von Eiweißnahrung leben. Wir sehen also, daß alle Stoffe, die im Stoffwechsel vorkommen, teils wie in der Pflanze zum Aufbau von komplizierten Körpern der Eiweißgruppe führen, teils wie im Fleischfresser allein aus dem Umsatz solcher Körper entstehen können. In der Pflanze sowohl wie im Tier aber findet schließlich ein fortwährender Zerfall von komplizierten Eiweißverbindungen statt, und als definitive Endpunkte des Stoffwechsels erhalten wir wieder einfache anorganische Verbindungen, dieselben, von denen der Aufbau der lebendigen Substanz ausgegangen ist, nämlich im wesentlichen Kohlensäure, Wasser und stickstoffhaltige Salze. Der ganze Stoffwechsel ist also nur eine Reihe von chemischen Prozessen, die sich um den Aufbau und um den Zerfall der Eiweißkörper und ihrer Verbindungen gruppieren. Und das gilt von der Pflanze sowohl wie vom Tier.
II. Die Formbildung[156].
Die Form der Organismen ist keine unveränderliche. Auch abgesehen von den Formveränderungen, die mit den Bewegungsvorgängen verbunden sind und die wir an anderer Stelle betrachten wollen, zeigt die Organismenwelt weitgehende Formveränderungen, die wir als ihre Entwicklung bezeichnen. Zwei große Reihen von Formveränderungen sind es, die wir an der lebendigen Substanz feststellen: die phylogenetische Entwicklungsreihe oder Stammesentwicklung, welche die Formveränderungen der lebendigen Substanz in ihrer Gesamtheit während der Erdentwicklung umfaßt, und die ontogenetische Entwicklungsreihe oder Keimesentwicklung, welche die Formveränderungen bezeichnet, die das einzelne Individuum während seines individuellen Lebens durchläuft. Beide Reihen stehen, wie HAECKEL[157] durch seine bahnbrechenden und für die moderne Entwicklungslehre grundlegenden Arbeiten gezeigt hat, in einem engen Zusammenhange untereinander, und zwar ist die Keimesentwicklung im allgemeinen eine abgekürzte Rekapitulation der Stammesentwicklung der Organismen.
A. Die phylogenetische Entwicklungsreihe.
Die Formen der lebendigen Substanz auf der Erde sind nicht stets dieselben gewesen, die wir jetzt auf der Erdoberfläche sehen. Die moderne Paläontologie, die Erforschung der versteinerten Organismen, die sich in den verschiedenen Schichten der Erdrinde finden, hat uns mit einer erdrückenden Fülle von Formen bekannt gemacht, die von den jetzt lebenden um so mehr abweichen, je älteren Schichten sie entstammen. Zwar hat die kritische Forschung der letzten Jahrzehnte eine ganze Zahl der wunderbaren Wesen, mit denen die ältere Geologie die Erde bevölkerte, ins Reich der Fabel gewiesen und als Phantasiebilder entschleiert, die mit den seltsamen Tiergebilden, welche der formenschöpferische Geist der Inder, der Babylonier, der Mexikaner erschuf, auf gleicher Stufe stehen; dennoch aber hat die Entdeckung wohlerhaltener fossiler Formen gerade in den letzten Jahrzehnten uns deutlich bewiesen, wie ganz anders die Organismenwelt der Erdoberfläche in früheren Perioden der Erdentwicklung zusammengesetzt war. Wir haben eine überwältigende Formenfülle von Organismen kennen gelernt, die vor uns Wasser und Land bevölkerten, aber erst die Deszendenzlehre hat einen inneren Zusammenhang in diesen Formenreichtum gebracht, indem sie zeigte, daß die fossilen Organismen nicht als alleinstehende Kuriosa, als „lusus naturae“, als mißlungene Versuche eines Schöpfers aufzufassen sind, wie es noch das 18. Jahrhundert glaubte, sondern daß sie die ausgestorbenen Zweige und Aeste eines gewaltigen, mächtig ausgebreiteten Stammbaumes sind, dessen jüngste und letzte Sprossen die jetzt lebenden Organismen repräsentieren, dessen älteste Aeste aus einer gemeinsamen Wurzel, dem Reich der Protisten, entsprungen sind, deren direkte, verhältnismäßig wenig veränderte Nachkommen wir noch jetzt in dem interessanten Formengebiet der einzelligen Wesen, der Rhizopoden und Bakterien, der Infusorien und Algen, vor uns haben. Der modernen Morphologie ist es im wesentlichen gelungen, durch kritische Forschung ein Bild vom Stammbaum der Organismen in großen Zügen zu entwerfen, und der Begriff der natürlichen „Verwandtschaft“, wie er von der früheren systematischen Morphologie in übertragener Bedeutung vorahnend angewandt worden war, hat durch die phylogenetische Forschung eine durchaus reale Bedeutung erhalten. Unsere jetzige Organismenwelt ist das Produkt einer sich über ungeheuer lange Zeiträume erstreckenden historischen Entwicklung, bei der die einen Formen, wie die Wirbeltiere, das Resultat mannigfaltiger und tiefgehender Umformungen sind, während die anderen Formen, wie die Protisten, sich in verhältnismäßig wenig veränderter Gestalt aus frühester Zeit her erhalten haben. Der letztere Umstand, daß wir in den einzelligen Protisten eine Organismengruppe kennen, welche die Charaktere der alten ehrwürdigen Vorfahren aller Organismen noch in verhältnismäßig wenig getrübter Reinheit besitzt, läßt uns übrigens gerade diese einzelligen Mikroorganismen auch physiologisch als eine besonders wertvolle Gruppe betrachten. Gehen wir aber noch etwas genauer auf die Tatsachen der Formentwicklung im allgemeinen ein.
Kein Stoff ohne Form. Form und Stoff sind untrennbar miteinander verknüpft, und jeder Stoff, jede Substanz hat eine bestimmte Form, welche der Ausdruck chemisch-physikalischer Faktoren ist, die teils durch die Beschaffenheit des betreffenden Stoffes selbst, teils durch die Einwirkungen, die der Körper von außen her erfahren hat, gegeben sind. Die lebendige Substanz ist nur ein Teil des Stoffes, der den Erdkörper zusammensetzt, und ist ihrer elementaren Beschaffenheit nach nicht von anderen Stoffen verschieden. Die lebendige Substanz muß also in ihrer Formbildung ebenso den mechanischen Gesetzen des Stoffes gehorchen wie alle anderen Körper. Hat aber ein Organismus irgendeine bestimmte Form, so sind es zwei Momente, deren Wechselwirkung seine weitere Formentwicklung bestimmt, ein konservatives Moment, das in formerhaltendem, und ein kommutatives, das in formveränderndem Sinne wirksam ist. Das formerhaltende Moment äußert sich in der Vererbung der vorhandenen Eigenschaften, das formverändernde in der Anpassung an veränderte Bedingungen.
1. Die Vererbung.
Die Vererbung ist eine der bekanntesten Tatsachen, so bekannt, daß wir sie im täglichen Leben kaum beachten, und uns ihrer nur bewußt werden in besonders charakteristischen Fällen. Die Vererbung ist einfach die Tatsache, daß sich die Eigenschaften der Eltern bei der Fortpflanzung auf die Kinder übertragen, so daß die Nachkommen den Vorfahren im allgemeinen gleichen. Die Nachkommen eines Käfers werden immer wieder Käfer von derselben Form; aus den Eiern eines Huhnes entwickelt sich immer wieder ein Huhn; ein Hund kann immer nur Hunde, ein Mensch nur Menschen erzeugen, niemals andere Wesen. Diese Vererbung der Eigenschaften der Eltern auf die Nachkommen geht bis in die feinsten Einzelheiten, und nicht bloß die äußere Körperform, sondern auch bestimmte Bewegungsformen, Haltungen, Gewohnheiten etc. vererben sich. Am deutlichsten sehen wir das beim Menschen, weil beim Menschen durch Uebung in der Unterscheidung unser Blick am meisten selbst für Kleinigkeiten geschärft ist. Es fällt uns aber die Tatsache der Vererbung in der Regel nur auf, wenn es sich um besonders charakteristische Merkmale handelt, wenn wir eigentümliche Gesichtszüge, Abnormitäten des Körpers, wie z. B. überzählige Finger, Behaarung des ganzen Körpers oder ungewöhnlicher Teile, körperliche Defekte etc. sich von den Eltern auf die Kinder übertragen sehen.
Allein nicht immer sehen wir die Vererbung aller Eigentümlichkeiten. Viele speziellere Eigenschaften vererben sich überhaupt nicht, andere übertragen sich nicht von den Eltern auf die nächste Generation, sondern erst wieder auf die zweite oder dritte. Dieses Wiederauftreten von Eigenschaften in der zweiten, dritten oder in noch späteren Generationen mit Ueberspringung der dazwischenliegenden ist als Rückschlag oder „Atavismus“ bekannt. So beobachtet man beim Menschen nicht selten, daß die Kinder wieder Eigentümlichkeiten ihrer Großeltern haben, die ihren Eltern zeitlebens fehlten. Ja, manche Eigentümlichkeiten können, nachdem sie viele Hunderte von Generationen hindurch latent geblieben waren, plötzlich wieder in einer Generation auftreten. Das wird besonders oft beobachtet bei Haustieren und Kulturpflanzen, die durch allmähliche Veredlung aus wilden Formen künstlich gezüchtet worden sind. Diese schlagen, wenn man sie verwildern läßt, in der Regel wieder in die wilde Stammform zurück, und jeder Tierzüchter, jeder Gärtner kennt eine Unzahl von Beispielen dafür. Es würde zu weit führen, diese Tatsachen hier ausführlicher zu behandeln, und es würde überflüssig sein, da durch die unsterblichen Werke DARWINs[158], sowie durch die Arbeiten der Morphologie, die im Anschluß an die Deszendenztheorie entstanden sind, eine Fülle von Beispielen ganz allgemein bekannt geworden ist.
Eine Frage ist in neuerer Zeit im Vererbungsproblem in den Vordergrund des Interesses getreten und äußerst lebhaft diskutiert worden, das ist die Frage nach der Vererbung erworbener Eigenschaften bei vielzelligen Organismen. Werden Eigentümlichkeiten, die während des individuellen Lebens durch Einwirkung äußerer Einflüsse entstanden sind, also z. B. Verstümmelungen, Krankheiten etc., auf die Nachkommen vererbt oder werden nur angeborene Eigenschaften, d. h. die Eigenschaften, die während der Entwicklung des Organismus ohne äußere Einwirkungen aufgetreten sind, übertragen? Während DARWIN[159], HAECKEL[160], EIMER[161], R. VON WETTSTEIN[162] und andere die Ansicht vertreten, daß auch erworbene Eigenschaften erblich sind, hat WEISMANN[163] in einer langen Reihe von Arbeiten zu zeigen gesucht, daß nur solche Eigenschaften vererbt werden, die bereits in ihrer Anlage in den Keimzellen des Organismus vorhanden waren, und H. DE VRIES[164] ist in einer Reihe botanischer Untersuchungen zu demselben Ergebnis gekommen. Es muß auf den ersten Blick verwundern, daß eine solche Frage, die scheinbar so leicht zu beantworten ist, Gegenstand so entgegengesetzter Vorstellungen sein kann; denn nichts scheint einfacher, als durch das Experiment zu entscheiden, ob sich etwa Verstümmelungen, die man an einem erwachsenen Tier anbringt, auf die Nachkommen vererben. In der Tat sind von WEISMANN und anderen solche Versuche gemacht worden. WEISMANN schnitt zwölf weißen Mäusen, von denen sieben weiblichen und fünf männlichen Geschlechts waren, die Schwänze ab und züchtete fünf Generationen von Nachkommen, im ganzen 849 Mäuse, von diesen schwanzlosen Eltern, aber keine einzige unter ihnen kam ohne Schwanz auf die Welt; die Schwänze hatten sämtlich bei den ausgewachsenen Tieren ihre völlig normale Länge. Solche Versuche sind mehrfach angestellt worden, aber sie beweisen nichts anderes, als daß in den betreffenden Fällen die Verstümmelungen nicht vererbt wurden. Daß überhaupt keine erworbenen Eigenschaften vererbt werden, darf daraus noch nicht geschlossen werden. Demgegenüber ist von der anderen Partei eine Anzahl von Beispielen beigebracht worden, aus denen hervorzugehen schien, daß gewisse erworbene Eigentümlichkeiten vererbt worden waren. Allein Weismann hat alle diese Fälle wieder einer sehr sorgfältigen Kritik unterzogen und zu zeigen versucht, daß sie aus verschiedenen Gründen nicht als beweiskräftig angesehen werden dürfen. So ist die Frage bisher noch immer nicht entschieden. Eine Entscheidung aber kann in der Tat nur durch das Experiment herbeigeführt werden. Freilich nicht durch Experimente wie die an den Mäusen. Es ist von vornherein im höchsten Grade unwahrscheinlich, daß sich die Verstümmelung des Schwanzes oder des Fingers oder ähnlicher Körperteile vererben sollte, denn es ist kaum anzunehmen, daß die betreffenden Organe mit den Geschlechtszellen, durch die allein eine Fortpflanzung und Vererbung geschieht, in einer solchen Beziehung stehen, daß ihre Verstümmelung überhaupt einen Einfluß auf die Geschlechtszellen ausüben sollte, und ein solcher wäre die erste Voraussetzung für eine Vererbung. Bei künftigen Experimenten müßten also Verstümmelungen an solchen Organen angebracht werden, die nachweislich mit den Geschlechtsorganen in Korrelation stehen, nur dann wäre an die Möglichkeit einer Vererbbarkeit zu denken. Solche Korrelationen sind aber nur wenige bekannt. So z. B. steht beim Menschen die Entwicklung des Kehlkopfes in Korrelation mit den Geschlechtsorganen. Männer, die in der Jugend durch Kastration die Hoden verloren haben, behalten zeitlebens einen in der Entwicklung zurückgebliebenen Kehlkopf und eine hohe Kinderstimme. Die herrlichen Soprane in der Peterskirche zu Rom, deren gesangskünstlerische Leistungen jährlich Tausende von Fremden anlocken, haben oft Beispiele dafür geliefert. Aehnliche Korrelationen müssen vor allem erst mehr erforscht und dann zu Versuchen benutzt werden, soll nicht das Experimentieren ein planloses Umhertasten bleiben, das die Entscheidung dem Zufall überläßt. Daß Einwirkungen auf die Geschlechtszellen, also auf Ei und Spermatozoon, die weitere Entwicklung in hohem Grade beeinflussen, ist von vornherein einleuchtend und zudem in neuerer Zeit durch eine große Zahl ausgezeichneter Versuche, besonders von den Brüdern HERTWIG[165], gezeigt worden. Wenn also Verstümmelungen am hochentwickelten Tiere oder an der Pflanze angebracht werden können, welche die lebendige Substanz der Geschlechts- oder Keimzellen verändern, dann erst wäre die Möglichkeit gegeben, experimentell zu entscheiden, ob sich die Verstümmelungen als solche durch ganz bestimmte Beeinflussung der Geschlechtszellen vererben, oder ob sie die Geschlechtszellen nur insoweit beeinflussen, als aus ihnen Nachkommen mit irgendwelchen anderen Defekten und Abnormitäten hervorgehen, die nicht der angebrachten Verstümmelung gleichen. Im ersteren Falle würde eine wirkliche Vererbung erworbener Eigenschaften vorliegen, im zweiten nicht. Von vornherein wäre es allerdings als höchst unwahrscheinlich zu bezeichnen, daß irgendeine Veränderung an einem Organ des Körpers, das mit den Geschlechtsdrüsen in Korrelation steht, gerade eine derartige Veränderung in den Geschlechtszellen hervorbringen sollte, daß bei der folgenden Entwicklung gerade wieder die gleiche Veränderung des betreffenden Organs resultierte. Man hätte nach unseren bisherigen Erfahrungen keine Möglichkeit, sich irgendeinen Begriff von einer derartigen Beeinflussung der Geschlechtszellen zu machen. Indessen ist eine experimentelle Entscheidung noch immer nicht getroffen, und so bleibt die Frage nach der Vererbung erworbener Eigenschaften immer noch offen. Was man bisher im bejahenden oder verneinenden Sinne geäußert hat, sind nichts als mehr oder weniger wahrscheinliche Vermutungen.
Allerdings scheint es auf den ersten Blick schwer, sich manche allgemeine Tatsache der Formenbildung ganz ohne die Annahme einer Vererbung erworbener Eigenschaften zu erklären. Man könnte z. B. folgende Ueberlegung anstellen. Die individuellen Variationen unter den Organismen einer und derselben Art können offenbar bei solchen Organismen, die sich wie die niedrigsten Lebewesen ungeschlechtlich fortpflanzen, in letzter Instanz nur durch direkte Einwirkung äußerer Faktoren auf das Keimplasma derselben entstehen. Sie sind also erworbene Eigenschaften, und wenn sich diese erworbenen individuellen Eigenschaften nicht vererben könnten, dann wäre überhaupt jede Möglichkeit einer Formenentwicklung der Organismen auf der Erdoberfläche ausgeschlossen, denn die ersten und einfachsten Organismen auf der Erde würden dann ihre Formen immer nur wieder durch Vererbung repetiert haben und könnten niemals Ausgangspunkte für die Entwicklung der ungeheuren Formenfülle sein, die aus ihrer allmählichen Umbildung entstanden ist. Man könnte hier freilich einwenden, daß die erworbenen Eigenschaften sich durchaus nicht notwendigerweise vererbt haben müssen, sondern vielmehr durch das Bestehenbleiben der Faktoren, welche sie bei den Vorfahren erzeugten, auch bei den Nachkommen immer wieder direkt erzeugt und erhalten würden, solange überhaupt diese wirksamen Faktoren in der äußeren Umgebung dauern. Allein, auch damit würde man noch nicht gut um die Annahme einer Vererbung erworbener Eigenschaften herumkommen, denn wäre eine solche tatsächlich nirgends vorhanden, so müßten die betreffenden Eigenschaften nach Wegfall der äußeren Faktoren, welche sie erzeugten, ebenfalls wieder wegfallen, und die Organismenform würde sofort wieder zu ihrer Urform zurückkehren. Das ist zwar bei kurzdauernden Einwirkungen tatsächlich vielfach der Fall (siehe unten Artemia und Amoeba), das trifft aber nicht zu für die Eigenschaften, die sich im Laufe von Jahrtausenden und Jahrmillionen festgesetzt haben. Sonst wäre es kaum verständlich, daß in ein und demselben Meerwasser, in ein und demselben Teich dauernd verschiedene Organismenformen unter völlig gleichen Bedingungen nebeneinander lebten. Diese ganze Betrachtung kann aber von einem anderen Standpunkte aus auch wieder erschüttert werden. Man kann nämlich sagen, daß die individuellen Variationen bei einzelligen Organismen, die sich nur durch Teilung fortpflanzen, ebenso wie bei vielzelligen Organismen, die sich durch besondere Geschlechtszellen vermehren, bereits im Keimplasma selbst vorhanden wären, auch wenn die äußeren Faktoren immer und überall die gleichen blieben, denn die Eigenschaften des Keimplasmas sind nicht bloß abhängig von den äußeren, sondern ebenso von den inneren Bedingungen, sie sind eben das Produkt sämtlicher Bedingungen. Die inneren Bedingungen sind aber bei zwei Teilhälften einer Zelle, selbst wenn die äußeren Bedingungen unverändert bleiben, niemals vollständig gleich, denn die Teilung der Zelle verläuft niemals in mathematisch genauer Weise. Wird nun ein Organismus unter veränderte äußere Lebensbedingungen gebracht, unter denen er selbst andere Eigenschaften erwirbt und Nachkommen erzeugt, die diese erworbenen Eigenschaften weiter fortpflanzen usf. durch Jahrtausende und Jahrmillionen hindurch, so könnte man die Tatsache, daß diese Eigenschaften schließlich auch noch fortbestehen nach Fortfall der Faktoren, die sie ursprünglich hervorriefen, auch erklären ohne die Annahme einer Vererbung neu erworbener Eigenschaften, nämlich durch die Jahrtausende hindurch geübte Selektion unter den individuell variierenden Keimen, die immer nur diejenigen Keime sich entwickeln und weiter fortpflanzen läßt, die den veränderten Bedingungen am meisten entsprechen, bis schließlich die Nachkommen, nicht durch die Vererbung der erworbenen Eigenschaften ihrer Vorfahren, sondern durch langdauernde natürliche Zuchtwahl unter den auf Grund der inneren Bedingungen des Keimplasmas variierenden Geschwistern den bestehenden Bedingungen angepaßt sind. (Vergl. den folgenden Abschnitt.) Indessen, alles das sind bloße Betrachtungen und Spekulationen, die nur mehr oder weniger plausible Wahrscheinlichkeitsgründe beibringen können. Ein exakter Beweis oder eine experimentelle Widerlegung der einen oder anderen Ansicht fehlt, wie gesagt, bis heute vollständig.
Bei dem Ausbleiben der Vererbung handelt es sich in allen Fällen immer nur um einzelne spezielle Eigentümlichkeiten. Die allgemeinen Charaktere eines jeden Organismus, die schon lange Generationen hindurch immer fortgepflanzt worden sind, mögen sie nun ausschließlich angeboren oder mögen sie wirklich einst von irgendeinem Vorfahren erworben sein, werden im wesentlichen auch immer wieder auf die Nachkommen übertragen. Eine Veränderung derselben findet so langsam statt, daß wir sie innerhalb weniger Generationen, die während eines oder weniger Menschenalter zur Beobachtung kommen, ja sogar innerhalb vieler Generationen, wie aus der Identität der in ägyptischen Gräbern gefundenen Tierwelt mit der jetzigen hervorgeht, kaum bemerken können.
So repräsentiert die Tatsache der Vererbung ein Moment, das in der phylogenetischen Entwicklungsreihe die Erhaltung der einmal vorhandenen Eigentümlichkeiten der Form bedingt.
2. Die Anpassung.
Nicht so unmittelbar wie das formerhaltende Moment der Vererbung tritt uns das formverändernde Moment der Anpassung entgegen, und zwar vornehmlich deshalb, weil der Vorgang der Anpassung fast immer erst innerhalb längerer Zeiträume bemerkbar wird, während die Tatsache der Vererbung uns bei jeder Generation von Organismen vor Augen tritt. Allein, wenn wir auch meist nicht leicht die Veränderungen der Anpassung selbst beobachten, so sehen wir doch täglich ihren Erfolg, der uns auf Schritt und Tritt begegnet, meist allerdings, ohne daß wir uns dieses Umstandes bewußt sind. Die für die ältere Naturforschung so wunderbare Tatsache der Zweckmäßigkeit in der lebendigen Natur, welche noch bis nach der Mitte des vorigen Jahrhunderts die ratlose Naturwissenschaft immer wieder der „Teleologie“ in die Arme trieb, d. h. der Annahme eines vorherbestimmten Schöpfungsplanes, wie ihn die dogmatische Theologie, altehrwürdige Ideen treulich bewahrend, noch heute annimmt, diese anscheinend so wunderbare Zweckmäßigkeit in der Natur ist der einfache Ausdruck oder besser Erfolg der Anpassung der Organismen an ihre Lebensbedingungen im weitesten Sinne.
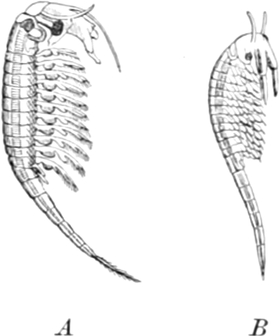
Fig. 77.
A
Branchipus stagnalis
, Süßwasserform.
B
Artemia salina
, Seewasserform desselben Krebses. Aus S
EMPER
.
Die Wassertiere sind an das Leben im Wasser, die Landtiere an das Leben im Trocknen, die Flugtiere an das Leben in der Luft in höchst zweckmäßiger Weise angepaßt. Die Fische haben als Extremitäten Flossen, die als Ruderorgane überaus vollkommen fungieren, die Landwirbeltiere haben statt der Flossen Beine zum Gehen und Kriechen auf dem Trocknen, die Vögel schließlich haben äußerst zweckmäßig gebaute Flügel, mit denen sie ihren leichten, von lufthaltigen Knochen gestützten Körper durch die Lüfte schwingen, in einer so vollkommenen Weise, wie es bis jetzt immer der vergebliche Wunsch aller Erfinder von künstlichen Flugmaschinen geblieben ist. Aber in einzelnen Fällen nur können wir in der Entwicklung des Individuums eine Anpassung an andere Verhältnisse verfolgen. So atmen z. B. die Larven der Amphibien, der Frösche, solange sie als geschwänzte Kaulquappen im Wasser leben, wie die Fische durch Kiemen, die in zweckmäßigster und einfachster Weise konstruiert sind, um die im Wasser gelöste Luft in gasförmigem Zustande aus dem Wasser zu gewinnen. Sobald sie aber als kleine Frösche auf das Land kommen, schrumpfen die Schwänze ein, degenerieren die Kiemen und entwickeln sich die Lungen, mit denen sie, wie alle Landtiere, die Luft direkt in den Körper aufnehmen. Hindert man die Kaulquappen künstlich, aufs Trockene zu kriechen, so behalten sie dauernd Schwanz und Kiemen, ohne daß die Lungen sich weiter entwickelten, trotzdem die Tiere eine stattliche Größe erreichen. Solche Beispiele zeigen, daß die Organismen in zweckmäßigster Weise an ihre Lebensverhältnisse angepaßt sind, und die neuere zoologische und botanische Forschung hat gefunden, daß diese Anpassungen sich bis auf die feinsten Einzelheiten erstrecken, an die ein unbefangener Beobachter niemals denken würde.
Da sich die Verhältnisse auf der Erdoberfläche seit ihrer Glutzeit her bis jetzt fortdauernd langsam geändert haben, da ferner fortwährend in lokal beschränkten Gebieten ziemlich schnelle Aenderungen der äußeren Lebensverhältnisse eintreten, so muß, wenn wir sehen, daß alle Organismen bis in die kleinsten Einzelheiten hinein in so vollkommener Weise den allgemeinen und speziellen Verhältnissen zweckentsprechend gebaut sind, fortwährend eine Anpassung der Organismen an die äußeren Lebensbedingungen stattfinden, und zwar in demselben Maße, wie sich die Lebensbedingungen ändern. Bestände diese Proportionalität zwischen der Aenderung der äußeren Bedingungen und der Aenderung der Organismenformen nicht, so müßte sich in absehbarer Zeit eine außerordentliche Unzweckmäßigkeit im Bau der Organismen herausgebildet haben. Wir wissen aber, daß die Fälle, in denen ein Organ unzweckmäßig oder auch nur überflüssig zu sein scheint, verhältnismäßig selten sind.
Der Modus der Anpassung der Organismen ist ein doppelter. Wir können eine individuelle oder persönliche Anpassung und eine phyletische oder Stammesanpassung unterscheiden. Beide finden in durchaus verschiedener Weise statt.
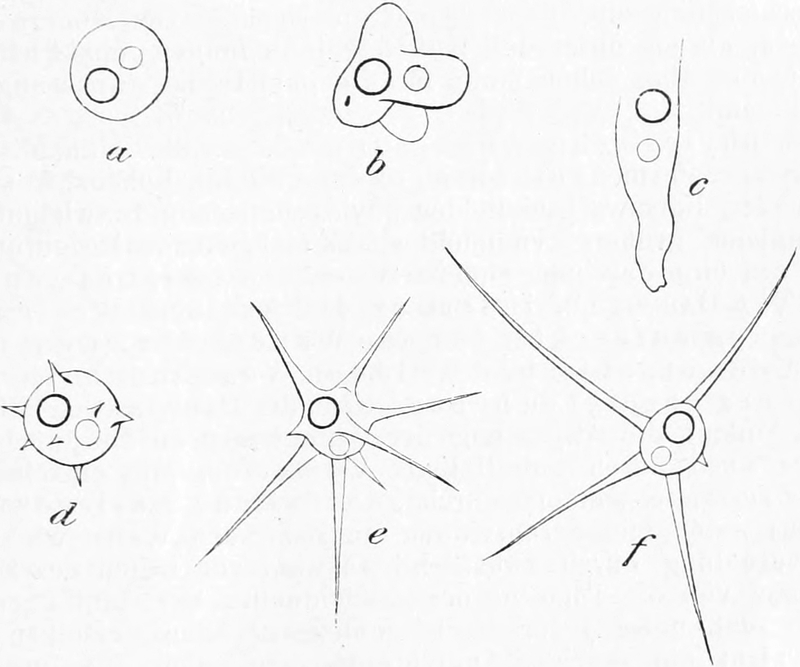
Fig. 78.
Amoeba limax
.
a
kontrahiert;
b
im Beginn der Pseudopodienbildung (Proteus-Form);
c
gewöhnliche Limax-Form;
d
,
e
,
f
Formen nach Zusatz von Kalilauge;
d
im Beginn der Einwirkung,
e
,
f
Radiosa-Formen.
Die individuelle Anpassung bewegt sich nur innerhalb sehr geringer Breiten und hat für die Formveränderung der phylogenetischen Entwicklungsreihe vielleicht nur untergeordnete, ja, wenn eine Vererbung erworbener Eigenschaften nicht stattfindet, überhaupt keine Bedeutung, denn sie besteht darin, daß die Veränderungen der äußeren Umgebung direkt auch verändernd auf den Organismus selbst einwirken, und zwar in der Weise, wie es den verschiedenen Momenten der Umgebung entspricht. Bei Gewohnheiten, in der Lebensweise etc. spricht sich hier die Anpassung meistens viel deutlicher aus als in der Form. Ein Mensch, unter andere Lebensbedingungen, in ein anderes Land, unter andere Leute versetzt, paßt sich im Laufe der Jahre mehr und mehr seiner Umgebung an und übernimmt ihre Sitten und Gebräuche, ihre Tätigkeiten und Lebensweise mehr und mehr. Weit seltener beobachtet man an Organismen durch individuelle Anpassung an andere Lebensbedingungen eine Aenderung der Körperformen, und zwar aus dem Grunde, weil dazu schon viel weitgehendere Aenderungen in den Lebensbedingungen notwendig sind, die nicht mehr so leicht ertragen werden wie die verhältnismäßig geringen Aenderungen, die nur zur Anpassung in der Lebensweise führen. Schon eine verhältnismäßig geringe Aenderung der Zusammensetzung des Wassers, in dem die Wassertiere leben, führt in den meisten Fällen den Tod herbei. Meerestiere in Süßwasser und Süßwassertiere in Meerwasser gesetzt, gehen meistens zugrunde; nur wenige Formen, besonders solche, die in den Flußmündungen leben, wie viele Fische, haben sich an beides angepaßt. Sehr interessant ist in dieser Beziehung ein Krebs, die Artemia salina. SCHMANKEWITSCH[166] nämlich stellte die eigentümliche Tatsache fest, daß sich dieser kleine, im Seewasser lebende Krebs durch langsame Gewöhnung an Süßwasser in eine andere Krebsform, und zwar in verdünntem Meerwasser zunächst in die Artemia Milhauseni, in reinem Süßwasser schließlich in den Branchipus stagnalis, Formen mit durchaus verschiedenen Charakteren, umwandeln läßt (Fig. 77). Auch von der einzelnen Zelle sind ähnliche Fälle bekannt. So haben A. SCHNEIDER, BRASS und ZACHARIAS[167] an Spermatozoen, Darmepithelzellen und Amöben durch Zusatz verschiedener Lösungen zum Medium bedeutende Formveränderungen erzeugt. Ueberhaupt bieten einzellige Organismen, besonders Infusorien und Rhizopoden, viele günstige Objekte für das Studium der Formveränderungen, welche die Körperform bei Veränderung des umgebenden Mediums erfährt. Sehr interessant ist folgendes Beispiel[168], aus dem hervorgeht, daß die verschiedenen Amöbenformen, die man nach der Gestalt der Pseudopodien zu unterscheiden pflegt, durchaus nicht immer als besondere Arten im Sinne der Systematik aufgefaßt werden dürfen. In faulenden Heuaufgüssen findet man an der aus Bakterienfilzen bestehenden Oberflächenhaut oft unzählige Massen kleiner Amöben. Auf den Objektträger gebracht besitzen die Hunderte und Tausende von Amöben zunächst im wesentlichen Kugelform (Fig. 78 a). Allmählich beginnen sie breitlappige Pseudopodien auszustrecken, und zwar nach verschiedenen Richtungen hin, so daß sie die Form einer Amöbe annehmen, die als Amoeba proteus (princeps) Fig. 78 b bekannt ist. Allein, bald bildet sich eine Hauptrichtung des Kriechens heraus, indem die ganze Amöbe gewissermaßen ein einziges langes Pseudopodium vorstellt und die Form der Amoeba limax annimmt. (Fig. 78 c). In dieser Form kriechen die Amöben sämtlich dauernd umher, solange sie nicht gestört werden. Verändert man nunmehr die Zusammensetzung des Mediums, indem man das Wasser durch Zusatz von Kalilauge sehr schwach alkalisch macht, so beobachtet man folgendes. Die Amöben ziehen sich zunächst sämtlich wieder kugelig zusammen, aber bald darauf treten an den Kugeloberflächen feine, spitze Pseudopodien hervor (Fig. 78 d), die länger und länger werden und schließlich wie lange, spitze Dornen erscheinen. So nehmen die Amöben im Laufe von etwa 15–20 Minuten die Gestalt einer sehr charakteristischen Amöbenform an, die unter dem Namen Amoeba radiosa (Fig. 78 e, f) als besondere, sehr gut abgegrenzte Amöbenform in der Systematik bekannt ist, und in dieser Form, deren Bewegungen sehr träge sind, verharren die Amöben, solange die alkalische Beschaffenheit des Mediums andauert. Bringt man sie wieder in ihr gewöhnliches Wasser, so wandelt sich ihre Gestalt allmählich wieder zu der gewöhnlichen Limax-Form um. Ganz ähnlich verhalten sich manche Schimmelpilze, die man an das Leben in konzentrierten Salzlösungen gewöhnen kann, wenn diese genügend Nährstoffe für den Mucor enthalten. Die Pilzfäden werden alsdann in der Regel bedeutend dünner und schlanker als in gewöhnlichem Wasser. Eine sehr interessante, zwar nicht die Form, sondern die Farbe der Organismen betreffende Anpassung haben vor kurzem ENGELMANN und GAIDUKOV[169] gefunden und experimentell studiert, das ist die Farbenveränderung der Oscillarienfäden unter dem Einfluß von farbigem Licht. Bei diesen Versuchen hat sich eine Gesetzmäßigkeit der Farbenanpassung herausgestellt, die ENGELMANN als das Gesetz der „komplementären chromatischen Adaptation“ bezeichnet, und die in dem Sinne zum Ausdruck kommt, „daß das Absorptionsvermögen des Chromophylls für die in der einwirkenden Strahlung dominierenden Wellenlängen zunimmt, für die relativ geschwächten abnimmt“, d. h. die ursprüngliche Farbe wird unter der Einwirkung farbigen Lichts mehr und mehr komplementär zu der des einwirkenden Lichts. Diese Verfärbung bleibt aber auch nach dem Ueberführen der angepaßten Algenfäden in gewöhnliches Licht noch monatelang bestehen und scheint sich sogar auf die folgenden Zellgenerationen zu übertragen. Sollte sich die letztere Wahrnehmung bei weiterer experimenteller Verfolgung bestätigen, so würde hier wirklich ein experimenteller Beweis für die Vererbung erworbener Eigenschaften vorliegen. Indessen bleiben erst die weiteren Versuche über die Frage abzuwarten. In vielen Fällen wirkt die Veränderung der Lebensbedingungen nicht unmittelbar auf die Form des Individuums, sondern in nicht sichtbarer Weise auf das Keimplasma der Geschlechtszellen ein, so daß erst die Nachkommen andere Formen annehmen, als sie unter den früheren Bedingungen gehabt hätten, ein Moment, das aber schon mehr für die phyletische Anpassung in Betracht kommt.
Die phyletische Anpassung, d. h. die allmähliche Anpassung der Formenreihen an die jeweiligen Lebensbedingungen, hat für den Formwechsel in der phylogenetischen Entwicklungsreihe eine ungleich größere, vielleicht allein maßgebende Bedeutung. Sie erfolgt auf eine durchaus andere Weise, und es ist die unsterbliche Tat DARWINs[170], indem er die Art und Weise dieser Anpassung aufdeckte, für das Wunder der Zweckmäßigkeit in der organischen Welt den Weg einer natürlichen Erklärung gezeigt zu haben. Nach der DARWINschen Selektionstheorie kommt die Anpassung der Organismen an die äußeren Verhältnisse nicht durch unmittelbare Veränderung des einzelnen Individuums zustande, sondern durch „natürliche Auslese“ (natural selection) unter vielen Individuen, in derselben Weise wie bei der Rassenveredlung durch künstliche Auswahl von seiten des Züchters. Ausgehend von der Tatsache der „individuellen Variabilität“, d. h. der Tatsache, daß unter jeder Nachkommengeneration desselben Elternpaares nicht ein einziges Individuum dem anderen völlig gleicht, wenn auch unserer Beobachtung vielleicht die Unterschiede häufig sehr klein erscheinen, findet DARWIN als notwendige Konsequenz des „Kampfes ums Dasein“ (struggle for life) eine Auslese, eine Selektion unter den verschiedenen Individuen jeder Generation nach dem Maße ihrer Lebensfähigkeit. Bekanntlich werden von allen Organismen ausnahmslos mehr Nachkommen im Keime erzeugt, als im erwachsenen Zustande genügende Lebensbedingungen finden würden. Um ein drastisches Beispiel anzuführen, hat man berechnet, daß, wenn von den mehreren Millionen Eiern, die ein Störweibchen ablegt, sich nur eine Million zu Weibchen entwickelte und in gleicher Weise fortpflanzte, bereits die dritte Generation auf der Erdoberfläche keinen Platz mehr finden würde, während die vierte Generation eine Portion Kaviar produzieren würde, die größer wäre als das Volumen der Erde! Allein, dieser wundervolle Zustand ist illusorisch, denn es kann eben nur eine ganz beschränkte Zahl von Individuen ihre Existenzbedingungen finden, alle anderen gehen zugrunde. Aber es sind nicht beliebige Individuen, die zugrunde gehen in diesem teils passiven, teils aktiven Kampf um die Existenzmittel, sondern fast ausschließlich diejenigen, die weniger lange den Kampf aushalten können, die weniger für die gegebenen Verhältnisse „passen“. Diejenigen dagegen, die am stärksten, am kräftigsten, am fähigsten sind, unter den betreffenden Bedingungen zu leben, werden die Konkurrenz überstehen und schließlich allein am Leben bleiben. So findet also eine Auslese der für die gegebenen Lebensverhältnisse passendsten Individuen statt, und indem sich diese Auslese, ebenso wie bei der Züchtung, über viele und schließlich unzählige Generationen fortsetzt, während die ausgelesenen Individuen ihre Eigentümlichkeiten durch Vererbung fortpflanzen, tritt eine allmähliche Anpassung der Individuen an die äußeren Verhältnisse ein, deren Folge oder Ausdruck die bis ins kleinste gehende Zweckmäßigkeit der Organismen in Hinsicht auf die Bedingungen ist, unter denen sie leben. Bleiben die äußeren Verhältnisse eine Zeitlang unverändert, so wirkt auch die Anpassung in konservativem Sinne; ändern sich die Verhältnisse, sei es lokal und plötzlich, sei es allgemein und allmählich, wie bei der Entwicklung der ganzen Erdoberfläche, so findet auch durch selektive Anpassung im Kampf ums Dasein eine proportional laufende Abänderung der Formen statt. Die Probe auf die Richtigkeit dieser Theorie liegt in den Experimenten der Tier- und Pflanzenzüchter, die so weit sind, daß sie durch künstliche Selektion nach bestimmten Gesichtspunkten gewisse neue Haustier- und Nutzpflanzenvarietäten, mit diesen oder jenen gewünschten Eigenschaften, im Laufe einiger Jahre auf Bestellung liefern können. Hier vertritt die künstliche Selektion des Züchters die Rolle der natürlichen Selektion, die in der freien Natur der Kampf ums Dasein vollzieht.
In neuerer Zeit hat HUGO DE VRIES[171] die DARWINsche Selektionstheorie durch seine „Mutationstheorie“ noch mehr auszubauen und weiterzuführen gesucht. Wie schon DARWIN unterscheidet DE VRIES bei der individuellen Variabilität kleine fluktuierende Variationen, wie sie immer unter den Nachkommen eines jeden Organismus auftreten, und große, plötzlich im Laufe längerer Generationen einer Organismenform auftretende Variationen, die nur zu einer bestimmten Zeit der langen Reihe von Generationen, also gewissermaßen sprungweise zum Vorschein kommen und die er als „Mutationen“ bezeichnet. In der Tat läßt sich ein solches plötzliches Mobilwerden oder eine solche plötzliche „Explosion“ einer durch lange Generationsreihen im wesentlichen konstant gebliebenen Organismenform durch die Erfahrung mehrfach feststellen und auch zahlreiche andere Forscher haben schon auf diese Tatsache aufmerksam gemacht. So befindet sich z. B. augenblicklich die großblumige Nachtkerze (Oenothera Lamarckiana) in einer Mutationsperiode und hat DE VRIES ein günstiges Material für seine experimentellen Untersuchungen geliefert. Diese Mutationen nun bilden nach DE VRIES das Hauptmaterial, an dem der Selektionsprozeß einsetzt und aus dem er neue Organismenformen züchtet, während die kleinen fluktuierenden Variationen zwar auch der Selektion unterliegen, aber wenig zur Veränderung einer Organismenform beitragen. Eine Organismenform, die sich durch viele Generationen, abgesehen von den kleinen fluktuierenden Variationen, die aber keine wesentliche Veränderung derselben herbeiführen, konstant erhalten hat, fängt plötzlich an, ganz ungeheuer stark zu variieren und in ihren Varietäten sehr verschiedenartige und ganz neue Eigenschaften zu zeigen. Von diesen Varietäten werden die den augenblicklichen äußeren Lebensbedingungen am wenigsten entsprechenden durch natürliche Selektion im Kampfe ums Dasein beseitigt. Die überlebenden pflanzen sich fort und variieren in ihren Nachkommen weiter so stark usf., so lange wie die Mutationsperiode anhält. Dann wird die nun ganz neu entstandene Organismenform oder die verschiedenen aus dem Selektionsprozeß hervorgegangenen neuen Formen wieder stabil und erhalten sich lange Generationen hindurch, abgesehen von den kleinen fluktuierenden Variationen, konstant, bis eine neue Mutationsperiode auftritt. Dieser glückliche Gedanke von DE VRIES beseitigt mit einem Male eine vielfach betonte Schwierigkeit für die Erklärung der Züchtung neuer Eigenschaften durch Selektion, das ist die Schwierigkeit, die darin besteht, die ersten Anlagen irgendeines neuen Organs, wie z. B. eines elektrischen Organs, die noch gar keinen Nutzen für den Organismus haben können, durch Züchtung auf selektivem Wege zu erklären. Durch das sprungweise, plötzliche Auftreten sehr stark abweichender und ganz neuer Eigenschaften bei einer in Mutation begriffenen Organismenform wird diese Schwierigkeit beseitigt. Wie WEISMANN, so findet auch DE VRIES die Bedingungen für die individuelle Variabilität und also auch für die Mutationen in der Zusammensetzung des Keimplasmas, nicht in den Einflüssen der Faktoren des umgebenden Mediums.
** *
Die DARWINsche Theorie gestattet es uns, ein übersichtliches und zusammenhängendes Bild von dem Zustandekommen des Formwechsels der lebendigen Substanz zu gewinnen, wie er sich vollzog von ihren einfachsten Formen, welche die Erdoberfläche belebten, an bis zu unserer jetzigen Organismenwelt. Die phylogenetische Entwicklung der Pflanzen und Tiere von den einzelligen Protisten an, einerseits durch die Kryptogamen und Monokotylen bis zu den höchstentwickelten Blütenpflanzen, anderseits durch die Cölenteraten und Würmer hindurch bis zu den hochentwickelten Arthropoden und Wirbeltieren, läßt sich auf natürliche Weise verstehen, wenn man die wenigen formbedingenden Momente in ihrer Wirkung erkannt hat.
Die Bemühungen der letzten Jahrzehnte, die Selektionstheorie durch das eingehendere Studium ihrer einzelnen Faktoren immer weiter auszubauen, haben in manchen Köpfen die Vorstellung erweckt, als ob es sich dabei darum handelte, die Selektionstheorie zu beseitigen. Ja, auf einer gewissen Seite, der die natürliche und mechanische Erklärung der Entstehung von Organismen Unbequemlichkeiten und Unbehagen bereitet, hat man, ohne genauer zu prüfen, schon frohlocken zu können geglaubt, weil die Selektionstheorie und sogar die Deszendenzlehre nun durch neue Forschungen überwunden worden sei. Von alledem kann gar keine Rede sein. Kein kritischer Naturforscher, der nicht durch irgendwelche Dogmen gebunden und voreingenommen ist, bestreitet heute mehr die Wirksamkeit der Selektion und die natürliche Deszendenz der Organismen.
Alle lebendige Substanz muß, wie jeder Körper, irgendeine Form haben, die durch ihre Beziehungen zu den chemischen und physikalischen Verhältnissen der Umgebung bedingt ist. Blieben die Beziehungen zwischen Organismen und Außenwelt immer gleich, so würde in der phylogenetischen Reihe keine Veränderung der Organismenformen zustande kommen, und da die lebendige Substanz die Eigenschaft der Fortpflanzung hat, so würden durch Vererbung die Nachkommen immer wieder den Vorfahren vollständig gleich sein. Da sich aber auf der Erdoberfläche wie auf jedem Weltkörper die Bedingungen fortwährend verändern, und da die Form der lebendigen Substanz, wie jedes Körpers, unter dem Einfluß seiner Umgebung steht, so muß sie sich ebenfalls fortwährend durch Anpassung an die neuen Bedingungen verändern. So sind es die beiden sich entgegenwirkenden Momente der Vererbung und Anpassung, deren Resultate im Formwechsel der phylogenetischen Entwicklungsreihe zum Ausdruck kommen.
B. Die ontogenetische Entwicklungsreihe.
Der alte Mythos von den Verwandlungen des vielgestaltigen PROTEUS findet nirgends eine schönere Verwirklichung als in der Entwicklungsgeschichte des Individuums. Wie die Organismenwelt als Ganzes im Laufe ungezählter Jahrtausende einen ununterbrochenen Formenwechsel durchgemacht hat, so durchläuft auch das einzelne Individuum, vor allem das vielzellige Tier, während seiner Entwicklung zum erwachsenen Organismus in der kürzesten Zeit eine lange Reihe von überaus mannigfaltigen Formen, bis es endlich seinen Erzeugern gleich oder ähnlich geworden ist. Es gehört nicht zur Aufgabe der allgemeinen Physiologie, den „Entwicklungskreis“ der einzelnen Organismengruppen genauer zu verfolgen, da sich die Lehre von der individuellen oder ontogenetischen Entwicklungsgeschichte der Organismen durch ihr mächtiges Aufblühen seit DARWINs und HAECKELs grundlegenden Ideen zu einer selbständigen Wissenschaft, der Embryologie, entwickelt hat, von deren hoher Bedeutung für das Verständnis unserer jetzigen organischen Formenwelt die letzten Jahrzehnte ein glänzendes Bild entworfen haben. Kein moderner Naturforscher oder Arzt, der sich nicht einem blinden Spezialistentum in die Arme wirft, kommt heute mehr ohne embryologische Kenntnisse aus. Allein, wenn auch die Beschäftigung mit den spezielleren Tatsachen der ontogenetischen Formentwicklung dem Embryologen als wohlerworbenes Recht zuerkannt werden muß, so hat doch die Physiologie auf gewisse allgemeine und elementare Lebensäußerungen einzugehen, die der Entwicklung des Individuums zugrunde liegen. Das sind die Tatsachen der Fortpflanzung.
Wir müssen die Fortpflanzungsvorgänge an der Zelle studieren, wie wir ja überhaupt immer mehr danach streben müssen, alle Lebensäußerungen der zellularphysiologischen Methode zugänglich zu machen. Gerade auf dem Gebiete der Fortpflanzungsvorgänge aber hat sich gezeigt, wie erfolgreich die zellularphysiologische Behandlungsweise ist, denn die Morphologie, die das Gebiet der Fortpflanzungsvorgänge für sich zu erobern wußte, hat die glänzenden Erfolge, die sie aufzuweisen hat, allein mit ihrer zellularen Methode errungen. Leider nur hat die Erforschung dieses ganzen Gebietes etwas darunter gelitten, daß es fast ausschließlich von Morphologen bearbeitet worden ist, obwohl es sich doch dabei in erster Linie um ein physiologisches Geschehen handelt. Dadurch ist eine gewisse Einseitigkeit der Betrachtung in dieses Gebiet hineingekommen, die erst in neuerer Zeit eine allmähliche Korrektur erfährt.
1. Wachstum und Fortpflanzung.
Die Fortpflanzung läßt sich vom Wachstum nicht trennen, denn sie stellt gewissermaßen nur einen speziellen Fall des Wachstums im weitesten Sinne vor, so daß schon die ältere Embryologie sich veranlaßt gesehen hat, die Fortpflanzung als ein Wachstum über das Maß des Individuums hinaus aufzufassen. In der Tat ist der allgemeine Vorgang, der das Wachstum ausmacht, eine Vermehrung der lebendigen Substanz, und das Wesen der Fortpflanzung liegt ebenfalls nur in der Vermehrung der lebendigen Substanz. Der Unterschied zwischen dem, was wir gewöhnlich im engeren Sinne als Wachstum bezeichnen, und dem Vorgange der Fortpflanzung liegt nur in dem Umstande, daß im ersteren Falle die neugebildete lebendige Substanz im dauernden Konnex mit dem ursprünglichen Organismus bleibt und sein Volumen vergrößern hilft, während im letzteren Falle sich ein Teil der Substanz von dem ursprünglichen Organismus trennt, sei es, daß er sich, wie in den meisten Fällen, ganz loslöst, sei es, daß er sich, wie bei der Vermehrung der Gewebezellen, nur durch eine Scheidewand absondert und an Ort und Stelle verharrt. Dementsprechend gibt es auch eine große Zahl von Uebergängen zwischen dem Wachstum im engeren Sinne und der Fortpflanzung der Zelle. Beispiele dafür liefern besonders manche vielkernige Zellen, wie z. B. das im Froschdarm lebende Infusorium Opalina, das anfangs einkernig ist und, indem es wächst, durch fortgesetzte Teilung des Kerns vielkernig wird. Hier kommt es also nur zu einer Fortpflanzung der Kerne, während das dazu gehörige Protoplasma bei seinem Wachstum im Zusammenhange bleibt, so daß schließlich eine sehr große, aber vielkernige Zelle resultiert.
Jede Zelle zeigt, wenn nicht dauernd, doch wenigstens zu einer gewissen Zeit ihres Lebens Wachstumsvorgänge: die Masse ihrer lebendigen Substanz vermehrt sich. Das kann nur durch Stoffaufnahme von außen und Bildung neuer lebendiger Substanz, also durch den Stoffwechsel, geschehen, und wir können den Begriff des Wachstums dahin präzisieren, daß wir sagen, es wird mehr lebendige Substanz im Stoffwechsel gebildet als zerfällt. Nun ist aber die Größe jeder Zelle, wie wir sahen, eine beschränkte. Sie ist durch chemische und physikalische Momente begrenzt und überschreitet ein gewisses Maß nicht. Vor allem hat die Größe jeder bestimmten Zellenform eine gerade für diese Zellenform gegebene Grenze, die wenig variiert. Nimmt daher die Masse der lebendigen Substanz der Zelle noch weiter zu, so muß das zu einem „Wachstum über das individuelle Maß hinaus“ führen, die Zellmasse muß sich teilen, d. h. sie pflanzt sich fort.
Durch die Teilung vermehrt sich also die Zelle, und jedes der entstandenen Teilstücke, jede Tochterzelle ist nun entsprechend kleiner, so daß sie wieder wachsen kann, bis sie die Grenze ihres individuellen Maßes von neuem erreicht hat. Bei der Fortpflanzung der Zelle durch Teilung müssen aber von beiden wesentlichen Zellbestandteilen, also vom Zellkern und Protoplasma, Teile auf die Tochterzellen übergehen, sonst würden diese keine vollständigen Zellen vorstellen und könnten daher nicht am Leben bleiben.
Wir werden erst in einem anderen Kapitel dazu kommen, die tieferliegenden Bedingungen für das Wachstum und für die Begrenzung der Größe der Zellen aufzusuchen, wenn wir auf die mechanische Analyse der Lebensäußerungen eingehen. Hier an dieser Stelle kommt es nur darauf an, einen Ueberblick über die Lebensäußerungen zu gewinnen. Lassen wir uns aber vorläufig bloß an der Tatsache genügen, daß die Fortpflanzung nur ein weiteres Wachstum ist, während die Größe der Zelle begrenzt ist, so folgt daraus, daß alle Fortpflanzung auf einer Teilung der lebendigen Substanz der Zelle beruht. Die verschiedensten Formen der Fortpflanzung sind nichts anderes als Zellteilungen, und VIRCHOW hat daher den alten HARVEYschen Satz: „omne vivum ex ovo“ mit Recht erweitert in den Satz, der die Grundlage aller modernen Vorstellungen über die Fortpflanzung der Organismen bildet: „omnis cellula e cellula“.
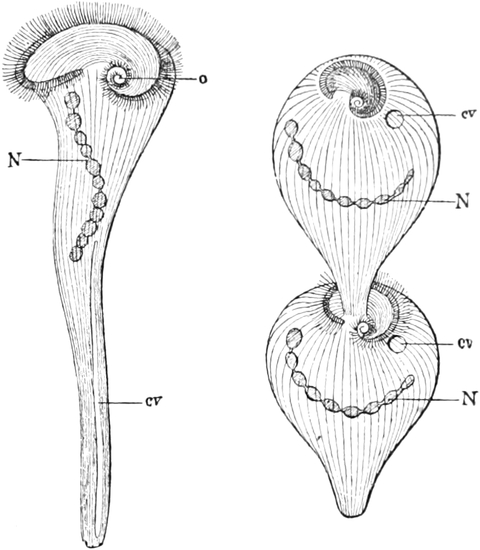
Fig. 79.
Stentor polymorphus
.
N
rosenkranzförmiger Kern,
o
Mundöffnung,
cv
kontraktile Vakuole.
I
Junges Individuum ausgestreckt,
II
älteres Individuum in Teilung begriffen, kontrahiert. Nach S
TEIN
.
Bei den einzelligen Organismen liegt das ohne weiteres auf der Hand. Sie pflanzen sich einfach durch Teilung ihres Zellleibes fort, indem jede Teilzelle schon während der Teilung wieder die Gestalt und Form der Mutterzelle annimmt und, wenn es sich, wie bei den Infusorien, um Zellen mit verschiedenartigen Anhängen und Organoiden handelt, nach der Teilung des Körpers die fehlenden Bestandteile wieder regeneriert (Fig. 79). Bei den vielzelligen Organismen, den Tieren und Pflanzen, dagegen sind besondere Fortpflanzungsorgane entwickelt, deren Zellen sich abschnüren und als Eier durch fortgesetzte Zellteilung wieder zu einem gleichartigen Organismus entwickeln (Fig. 80). Bei den Organismen mit getrennten Geschlechtern sind die Geschlechtszellen der Fortpflanzungsorgane bei männlichen und weiblichen Individuen verschieden. Die männlichen Geschlechtszellen sind die Samenzellen oder Spermatozoen, die weiblichen die Eier. Zur Erzeugung eines neuen Individuums muß eine Vereinigung beider Geschlechtszellen, eine „Befruchtung“, stattfinden, abgesehen von gewissen Fällen, von denen eine „Parthenogenese“ besteht, d. h. wo sich aus unbefruchteten Eiern lebensfähige Individuen entwickeln können, wie bei manchen Krebsen, Insekten etc. Schließlich aber gibt es bei niederen vielzelligen Tieren neben der geschlechtlichen Fortpflanzung noch eine Art der ungeschlechtlichen Vermehrung, nämlich durch Teilung und Knospenbildung. In beiden Fällen werden ganze Komplexe von Zellen abgetrennt. Bei der Teilung zerschnürt sich z. B. bei gewissen Würmern (Fig. 81) der ganze Körper, nachdem er durch Zellteilung eine bestimmte Größe erreicht hat, in zwei oder mehrere Teile, die sich wieder zu vollständigen Individuen regenerieren. Bei der Knospung z. B. vieler Cölenteraten (Fig. 82) bildet sich an einer Stelle des Körpers durch schnelle Zellvermehrung eine Knospe, die aus den wesentlichen Schichten des Körpers Zellelemente enthält und sich ebenfalls abschnürt, um sich zu einem neuen Individuum zu regenerieren.
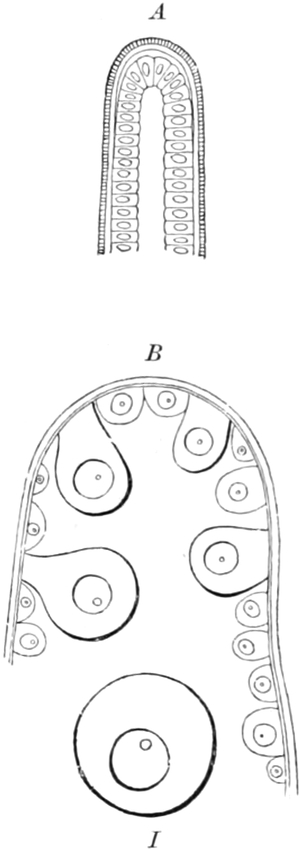
Fig. 80.
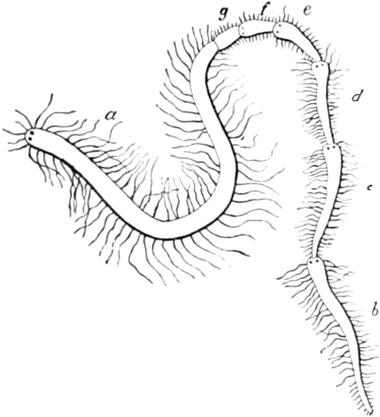
Fig. 81.
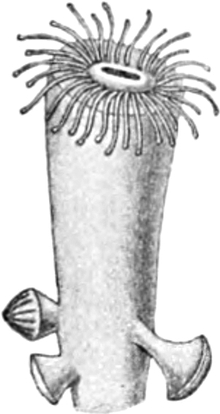
Fig. 82.
Fig. 80. I Eibildung eines Seeigels. A Stück eines jungen Eierstocks mit innerem Keimepithel, B Stück eines älteren Eierstocks, in dem sich die Zellen des Keimepithels zu Eiern entwickeln, welche sich abschnüren. Nach LUDWIG. II Eiröhre eines Insektenovariums. In der Röhre liegen Eier von den verschiedensten Bildungsstufen. Nach HATSCHEK.
Fig. 81. Myrianida, ein Wurm, in Teilung begriffen. Die einzelnen Individuen hängen noch als Glieder einer Kette zusammen. a Das ursprüngliche Tier, b, c, d, e, f, g die Teilglieder vom ältesten (b) bis zum jüngsten (g). Nach MILNE-EDWARDS.
Fig. 82. Knospenbildung eines Polypen. Nach CLAUS.
In allen Fällen also geschieht die Fortpflanzung, mag sie eine ungeschlechtliche oder eine geschlechtliche sein, immer nur durch Zellteilung, die auf Wachstum beruht. Verfolgen wir daher die einzelnen Arten der Zellteilung noch etwas genauer und gehen wir auf die merkwürdigen Vorgänge ein, die sich dabei an der Zelle abspielen.
2. Die Formen der Zellteilung.
Bei jeder Teilung einer Zelle in selbständige Tochterzellen teilt sich sowohl der Kern wie das Protoplasma, und die Tochterzellen übernehmen Substanz von beiden allgemeinen Zellteilen. Während aber die Teilung des Protoplasmas sehr einfach verläuft, indem sich der Zellkörper nur durch eine Furche tiefer und tiefer einschnürt, bis das Protoplasma in zwei Hälften zertrennt ist, erfolgt die Teilung des Kerns nur in wenigen Fällen so einfach; in den meisten Fällen treten äußerst komplizierte Veränderungen am Kern auf, die aber merkwürdigerweise bei den meisten Zellen, sowohl bei tierischen wie bei pflanzlichen Zellen, im wesentlichen übereinstimmend verlaufen. Ueber die feineren Vorgänge bei der Kernteilung ist in den letzten drei Jahrzehnten eine kaum noch übersehbare Literatur entstanden, da man, durch das höchst eigentümliche Verhalten des Kerns bei der Zellteilung verführt, irrtümlich zu der Ansicht gelangt war, der Kern sei der allein wesentliche Zellbestandteil, der auch allein bei der Zellteilung die Uebertragung der spezifischen Eigenschaften der Zelle, also die Vererbung vermittele. Die grundlegenden Arbeiten über die Vorgänge der Zellteilung lieferten die bewunderungswürdigen Untersuchungen von BÜTSCHLI[172], FLEMMING[173], STRASBURGER[174], HERTWIG[175], VAN BENEDEN[176], BOVERI[177] und anderen, welche die geeignetsten Objekte für diese Zwecke in den Zellen junger Salamanderlarven, in den Pollenzellen der Lilien, in den durchsichtigen Eiern des Pferdespulwurms und der Seeigel fanden.
a) Die direkte Zellteilung.
Die einfachste Form der Zellteilung ist die „direkte oder amitotische Zellteilung“, die aber nur wenig verbreitet ist und außer bei einigen einzelligen Organismen und Leukocyten nur noch an sehr wenigen anderen Zellformen angetroffen worden ist. Als Typus kann uns die Teilung der Amöben dienen (Fig. 83). Während die Amöbe kriecht, nimmt allmählich der ursprünglich runde Kern eine längliche Form an, wird dann biskuitförmig, schnürt sich in der Mitte durch, indem die immer schmaler werdende Verbindungsbrücke zerreißt, und bildet so zwei neue Kerne, die sich alsbald wieder abrunden. Erst jetzt beginnt die Teilung des Protoplasmakörpers, indem sich die Amöbe in ähnlicher Weise semmelförmig zwischen beiden Kernen einschnürt und nach beiden Seiten auseinander kriecht, bis nur noch ein dünner Protoplasmafaden beide Hälften verbindet. Auch dieser zerreißt schließlich, so daß nun zwei neue Amöben mit je einem Kern aus der Teilung hervorgegangen sind. Freilich erfordert der Vorgang längere Zeit, meist mehrere Stunden, und geht durchaus nicht immer ganz glatt vor sich, sondern das Protoplasma fließt öfter wieder zu einem Klumpen zusammen, nachdem schon eine beträchtliche Einschnürung zustande gekommen war, fließt dann aber wieder auseinander, bis schließlich einmal die Verbindungsbrücke durchreißt.
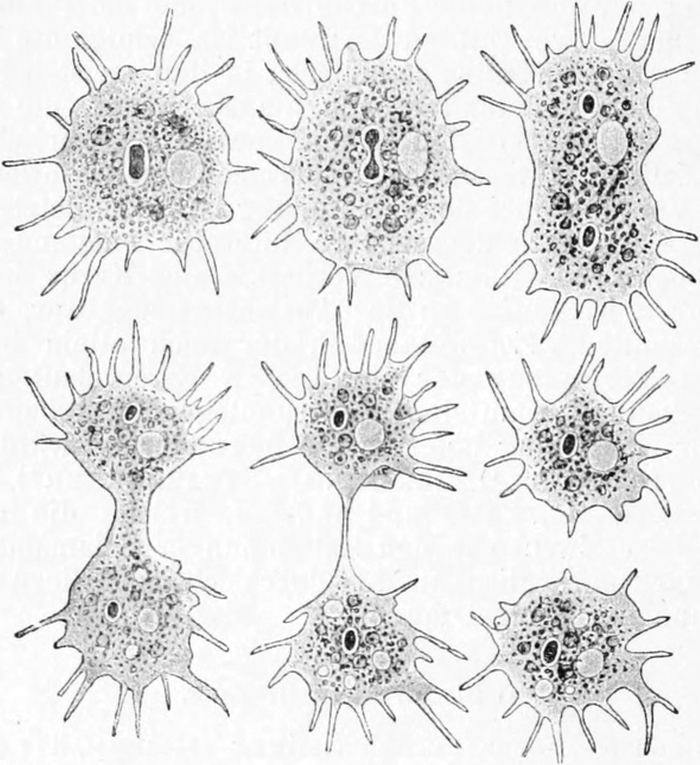
Fig. 83.
Amoeba polypodia in sechs aufeinanderfolgenden Stadien der Teilung
. Der dunkle, hellumrandete Körper im Innern ist der Zellkern, der blasse Körper die kontraktile Vakuole. Nach F. E. S
CHULZE
.
b) Die indirekte Zellteilung.
Bei weitem die größte Mehrzahl aller tierischen und pflanzlichen Zellen dagegen befolgt den Modus der sogenannten „indirekten oder mitotischen Zellteilung“, wobei das Protoplasma sich zwar ebenfalls einfach durchschnürt, der Kern dagegen sehr auffällige und typische Veränderungen von großer Regelmäßigkeit erleidet. Es sind von den einzelnen Autoren verschiedene Stadien unterschieden, die mit verschiedenen Namen bezeichnet worden sind. Ganz allgemein können wir zwei Phasen in der Kernteilung erkennen, eine progressive, in der die Veränderungen ihren Höhepunkt erreichen, und eine regressive, in der die Veränderungen an den beiden aus der Teilung hervorgegangenen Kernhälften sich wieder zurückbilden bis zum „Ruhestadium“ des Kerns, mit dem man den Zustand bezeichnet, in dem der Kern keine Teilungsvorgänge zeigt. Allein besser als alle Einteilungen und Beschreibungen führt uns die Abbildung die wichtigsten Stadien der Kernteilung vor Augen (Fig. 84).
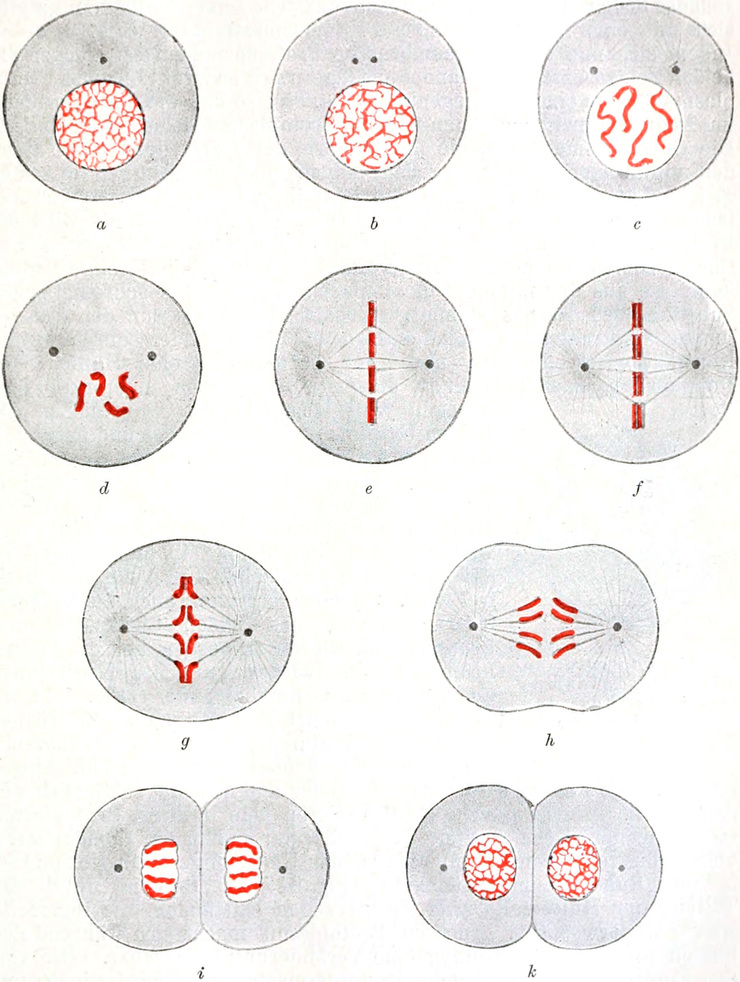
Fig. 84.
Schematische Darstellung der mitotischen Kernteilung
. Nach B
OVERI
.
⇒ GRÖSSERES BILD
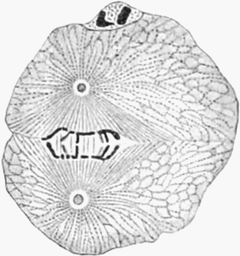
Fig. 85.
Zentrosomen mit Protoplasmastrahlung bei der Teilung der Eizelle
. Nach B
OVERI
.
Gehen wir von dem „ruhenden Kern“ aus, der sich eben zur Teilung anschickt, so sehen wir, daß die chromatische Substanz, die, wie wir wissen, aus Nukleinen besteht, sich zu kurzen Fäden, den „Chromosomen“ anordnet, die lose im Kern liegen. Gleichzeitig teilt sich das bisher einheitliche Zentrosom und jede seiner Teilhälften umgibt sich mit einer eigenen feinen Protoplasmastrahlung (Fig. 84 a–c). Indem sich nun die Kernmembran im Protoplasma auflöst, rücken die beiden Zentrosomen auseinander und lagern sich an zwei Polen des Protoplasmakörpers einander gegenüber (Fig. 85), so daß die Chromosomen im Aequator zwischen ihnen frei im Protoplasma liegen (Fig. 84 d, e). Die Chromosomenfäden, die dieser Form der Kernteilung den Namen der mitotischen Teilung gegeben haben, und die sämtlich ungefähr gleiche Länge haben, spalten sich jetzt ihrer Länge nach, so daß aus jedem Faden ein Doppelfaden wird (Fig. 84 f). Gleichzeitig wird die Protoplasmastrahlung der Zentrosomen nach den in der Mitte gelegenen Chromosomen hin deutlicher und bildet so eine spindelförmige Fadenfigur, die aus der mit dem Protoplasma vermischten achromatischen Substanz des Kernes stammt. Alsbald ziehen die von den Zentrosomen ausstrahlenden Spindelfasern die Doppelfäden durch eigene Kontraktion auseinander, und zwar so, daß die eine Hälfte jedes Doppelfadens nach dem einen, die andere nach dem anderen Pol hingezogen wird (Fig. 84 g, h). So weichen die beiden Fasergruppen auseinander und entfernen sich vom Aequator der Spindelfigur. Damit ist die progressive Phase der Kernteilung vorüber, und es beginnt die regressive. Die beiden Gruppen der Chromatinfäden rücken weiter und weiter nach beiden Polen hin auseinander, so daß der ganze äquatoriale Teil der Spindelfigur frei wird. Zugleich beginnen auch die Spindelfasern zwischen den beiden Chromatinfädengruppen undeutlicher zu werden, und die Fasern krümmen sich wieder zu einer Knäuelform an jedem Pole durcheinander (Fig. 84 i, k). Währenddessen hat sich der ganze Zellkörper durch eine Ringfurche, deren Ebene senkrecht zur Achse der beiden Kernpole steht, eingeschnürt. Die Furche wird tiefer und tiefer und scheidet schließlich die ganze Zelle in zwei gleiche Hälften, deren jede in ihrem Protoplasma einen eigenen Kern besitzt, der sich nun, indem die Spindelfasern vollständig verschwinden, mit einer neuen Kernmembran umgibt und so in sein Ruhestadium zurückkehrt (Fig. 84 i, k). So sind durch die Teilung der Mutterzelle zwei Tochterzellen entstanden, die ihrerseits wieder weiterwachsen. Auch im Protoplasma macht sich während des letzten Stadiums der Teilung eine Veränderung bemerkbar. Die von den Zentrosomen ausgehende Protoplasmastrahlung wird wieder undeutlich und verschwindet schließlich fast ganz.
Die hier gegebene schematische Darstellung des mitotischen Zellteilungsvorgangs erfährt bei verschiedenen Zellformen mannigfaltige, aber nur geringe und unwesentliche Abänderungen, die wesentlich in Verschiedenheiten der Chromosomenzahl und in Variationen der zeitlichen Zusammenordnung der einzelnen Vorgänge bestehen. Im übrigen ist bei allen mitotischen Zellteilungen der Vorgang im Prinzip der gleiche.
Während im allgemeinen sowohl die mitotische wie die amitotische Kernteilung je an ganz bestimmte Zellformen geknüpft ist, in der Weise, daß die eine Zellart nur mitotisch, die andere nur amitotisch sich teilt, sind in neuerer Zeit Fälle festgestellt worden, in denen ein und dieselbe Zellart das eine Mal mitotisch, das andere Mal amitotisch sich fortpflanzt, je nach den äußeren Bedingungen, unter denen sie sich teilt. So hat PFEFFER[178] gefunden, daß die Zellen der Fadenalge Spirogyra, die sich sonst stets mitotisch teilen, wenn man sie in Wasser mit ca. 1–0,5-proz. Aether züchtet, was durchaus unschädlich ist, sich nunmehr rein amitotisch fortpflanzen. Dabei bleiben die sämtlichen übrigen Lebensäußerungen vollkommen unverändert. Die Ansicht von E. H. ZIEGLER und VOM RATH, daß die amitotische Teilungsart ein Degenerationssymptom sei, wird damit hinfällig, um so mehr, als GERASSIMOFF auch unter natürlichen Lebensverhältnissen bei Spirogyra amitotische Zellteilungen beobachten konnte, ohne daß irgendwelche Störungen im Leben der Algen bemerkbar gewesen wären.
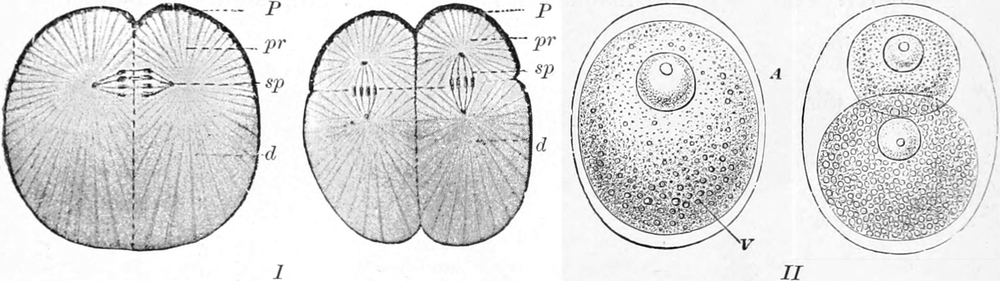
Fig. 86.
I
Teilung des Froscheies
.
P
Pigmentierte Oberfläche des Eies,
pr
protoplasmatischer Pol,
d
dotterreicher Eipol,
sp
Kernspindel. Nach O. H
ERTWIG
.
II
Inäquale Teilung des Eies eines Wurmes
(
Fabricia
).
A
protoplasmatischer,
V
dotterreicher Pol. Nach H
AECKEL
.
Bei den einzelligen Organismen verläuft der Modus der Kernvermehrung nicht immer genau nach dem gewöhnlichen Schema der mitotischen oder amitotischen Kernteilung. Es finden sich hier, wie namentlich durch die sorgfältigen Untersuchungen von SCHAUDINN[179] nachgewiesen worden ist, eine ganze Reihe von verschiedenartigen und gänzlich abweichenden Kernteilungsmodi, die im einzelnen nicht näher besprochen werden können, die aber deutlich zeigen, daß in jener primitiven Gruppe von Organismen, aus der sich erst die Metazoen entwickelt haben, die Kernteilungsverhältnisse noch nicht so einseitig konsolidiert sind wie bei den Ei- und Gewebezellen der Metazoen. Während bei den Ei- und Gewebezellformen der Metazoen, wie gesagt, der Modus der mitotischen Kernteilung in allen wesentlichen Bestandteilen überall der gleiche ist, verläuft die Teilung des Zellganzen nicht immer in völlig übereinstimmender Weise. Besonders kommen bei der Teilung von Eizellen, die viel Nährmaterial (Dotter) enthalten, in verschiedenen Fällen Abweichungen vom Typus vor. O. HERTWIG[180] können wir übersichtlich die sämtlichen Formen der Zellteilung, die überhaupt bekannt sind, in vier Typen unterbringen:
Die totale Teilung. Die äquale Teilung. Die inäquale Teilung. Die Knospung.
Die partielle Teilung.
Die Vielzellbildung.
Die Reduktionsteilung.
Bei der totalen Teilung wird das Protoplasma der Tochterzellen durch eine Scheidewand vollständig voneinander geschieden, so daß immer vollkommene Zellen aus der Teilung hervorgehen. Aber auch dabei machen sich noch gewisse Unterschiede bemerkbar. In einem Falle, bei der äqualen Teilung, sind die Tochterzellen einander völlig gleich, wie in dem oben geschilderten Typus (Fig. 84). Im anderen Fall, bei der inäqualen Teilung (Fig. 86), sind die beiden Tochterzellen sowohl ungleich groß als auch nach ihrem Inhalt verschieden, insofern die größere Tochterzelle die Hauptmasse des passiven Dotters enthält, während die kleinere vorwiegend aus aktivem Protoplasma besteht. Dadurch sind bereits Unterschiede gegeben, die für die weiteren Teilungen ins Gewicht fallen, so daß die Verschiedenheiten immer größer werden. Im dritten Fall, bei der Knospung schließlich, löst sich bei der Teilung nur ein ganz kleines Klümpchen von der Eizelle los, wie das vor allem bei der Bildung der sogenannten „Polzellen“ oder „Richtungskörperchen“ während der Reifung des Eies stattfindet, wo dieser Prozeß zweimal hintereinander erfolgt (Fig. 87).
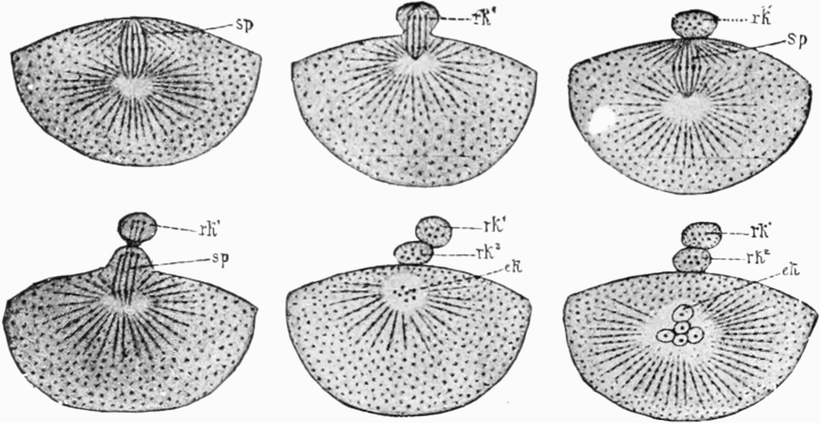
Fig. 87.
Bildung der Polzellen bei einem Seestern
.
sp
Kernspindel,
rk
1
erstes Richtungskörperchen,
rk
2
zweites Richtungskörperchen,
ek
Eikern.
Bei der partiellen Teilung schnürt die Teilungsfurche, welche die beiden Tochterhälften scheidet, nicht die ganze Zelle durch, sondern nur einen Teil, so daß die Tochterhälften auch bei den folgenden Teilungen noch durch eine gemeinschaftliche Protoplasmamasse an ihrer unteren Seite verbunden bleiben (Fig. 88). Diese Form wird als „discoidale Eifurchung“ bezeichnet.
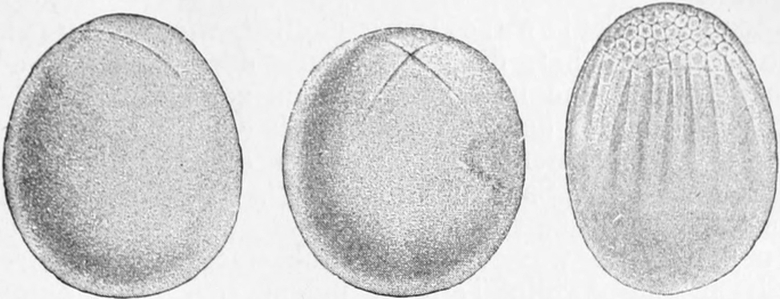
Fig. 88.
Discoidale Furchung des Cephalopoden-Eies
. Nach W
ATASE
.
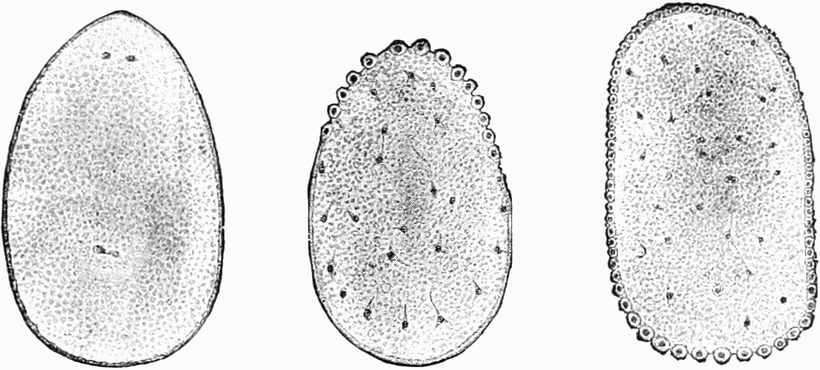
Fig. 89.
Superficielle Furchung eines Insekteneies
in drei aufeinanderfolgenden Stadien. Nach B
OBRETZKY
.
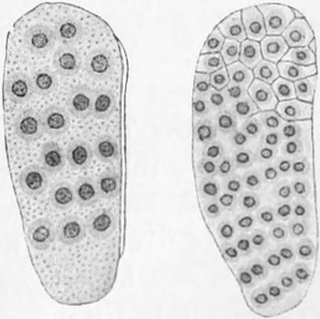
Fig. 90.
Vielzellbildung bei der Furchung eines Insekteneies
in zwei aufeinanderfolgenden Stadien. Nach B
ALBIANI
.
Bei der Vielzellbildung tritt zunächst überhaupt keine Teilung des Protoplasmas ein, sondern nur die Kerne vermehren sich in der Eizelle, wandern aber später an die Oberfläche und umgeben sich dann hier je mit einer gesonderten Protoplasmahülle, so daß nun eine indifferente Dottermasse an ihrer ganzen Oberfläche, umgeben von einer einschichtigen Lage gesonderter Zellen, entsteht (Fig. 89 und 90), ein Vorgang, der als „superficielle Eifurchung“ bezeichnet worden ist.
Als eine besondere Art der Vielzellbildung können wir die „Sporenbildung“ auffassen, die besonders im Protistenreich verbreitet ist. Das Charakteristische dieser Form der Zellvermehrung liegt darin, daß der Kern in eine sehr große Zahl winziger Körnchen zerfällt. Jeder dieser kleinen Kerne umgibt sich mit einer gewissen Menge von Protoplasma, so daß winzige Zellterritorien entstehen, die als Amöben oder Geißelzellen frei werden, während der übrige Protoplasma- oder Restkörper zugrunde geht. Die frei gewordene „Schwärmspore“ repräsentiert eine sehr kleine Zelle mit einem Kern und entwickelt sich langsam wieder zu der Form der Protistenzelle, von der sie abstammt.
Bei der Reduktionsteilung endlich, wie WEISMANN gewisse Vorgänge bezeichnet hat, die zur Bildung der Eizellen und Spermazellen im Eierstock und im Hoden führen, zeigt sich eine kleine Abweichung im Verhalten der Chromatinfäden des Kerns bei der Teilung. Die Sperma- oder Samenzellen entstehen durch mehrfache Teilung anderer Zellen, der „Samenmutterzellen“. Die erste Teilung der Samenmutterzelle verläuft noch nach dem oben geschilderten Typus. Ehe aber die Kerne wieder in das Ruhestadium übergetreten sind, erfolgt gleich eine zweite Teilung, indem sich jedes Zentrosom in zwei Hälften teilt, die auseinanderrücken und die eben erst aus der ersten Teilung hervorgegangenen Chromatinfäden nach beiden Seiten hin zu sich heranziehen, ohne daß diese sich erst vorher durch Längsteilung wie bei der normalen Teilung spalten können. So wandert die Hälfte der Chromosomen nach dem einen, die Hälfte nach dem anderen Pol hinüber, so daß bei dieser zweiten Teilung jeder Kern nur halb so viel Chromosomen mitbekommt wie bei einer normalen Teilung (Fig. 91).
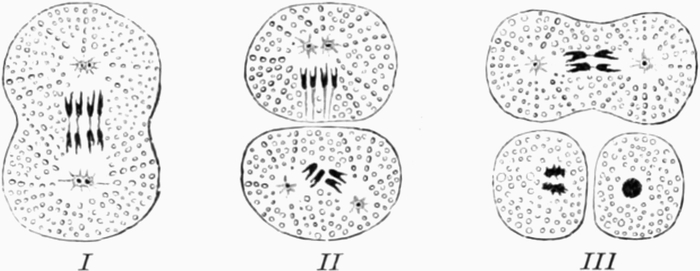
Fig. 91.
Reduktionsteilung bei der Entstehung der Samenzellen aus einer Samenmutterzelle des Pferdespulwurms
. Nach O. H
ERTWIG
.
Damit sind die wesentlichen Typen der Zellteilung, die uns bis jetzt bekannt geworden sind, erschöpft. Was allen gemeinsam ist, das ist die Uebertragung von Kernsubstanz und Protoplasma auf die Tochterzellen.
3. Die Befruchtung.
Der Akt der Befruchtung ist mit dem tiefen Mysterium, das der Menschheit mächtigste Motive umgibt, innig verknüpft. In der Tat — der Naturforscher darf das aussprechen — einer der gewaltigsten Faktoren, die das ganze organische Leben beherrschen, die geschlechtliche Liebe in ihrer natürlichen Form, zielt, ohne daß wir uns dessen bewußt sind, auf den mikroskopischen Akt der Befruchtung der weiblichen Eizelle durch die männliche Samenzelle hin. Es könnte wunderbar erscheinen, daß so gewaltige Motive, wie sie die Triebfedern der Geschlechtssphäre im Menschenleben vorstellen, darin gipfeln, einen winzigen Vorgang herbeizuführen, der nicht einmal mit bloßen Augen wahrzunehmen ist; allein, wenn man berücksichtigt, was auf der anderen Seite aus diesem mikroskopischen Akt der Vereinigung von Ei- und Samenzelle resultiert, was für eine unendlich lange Kette von komplizierten Prozessen und Veränderungen bei der Entwicklung des neuen Organismus aus dem Ei durch die Befruchtung angeregt wird, was schließlich das Endergebnis dieser langen Reihe von Entwicklungsprozessen ist, das hochkomplizierte Tier, der Mensch, mit dem unermeßlichen Reichtum seines Lebensinhalts, dann verliert diese Tatsache ihr Wunderbares, und wir gelangen vielmehr dazu, dem winzigen Akt der Befruchtung eine unabsehbare Bedeutung beizulegen, die er in potentia enthält. Kein Wunder daher, wenn schon seit alten Zeiten Aerzte und Naturforscher den Vorgang der geschlechtlichen Zeugung, der das äußerliche Beiwerk des Befruchtungsvorgangs vorstellt, auf den er hinzielt, vielfach zum Gegenstand tiefen Nachdenkens gemacht haben. Indessen, erst nachdem LEEUWENHOEK das Mikroskop konstruiert hatte, entdeckte sein Schüler LUDWIG VAN HAMMEN die Samenzellen, die wegen ihrer lebhaften Eigenbewegungen als „Samentierchen“ oder „Spermatozoen“ bezeichnet wurden, und erst die ungeahnte Vervollkommnung der Mikroskope in unserer Zeit machte die glänzenden Arbeiten von BÜTSCHLI, HERTWIG, VAN BENEDEN, BOVERI und anderen möglich, die uns bis über die feinsten Einzelheiten des Befruchtungsvorgangs Aufschluß gegeben haben.
Beim Menschen und den höheren Tieren ist der Vorgang der Befruchtung nicht zu beobachten, weil er sich im Innern des weiblichen Körpers verbirgt, und weil die Möglichkeit, die Eizellen außerhalb des Körpers am Leben zu erhalten, um sie mit Sperma zu befruchten, nicht gegeben ist. Das letztere gelingt aber bei gewissen niederen Tieren, und so hat man an Eiern, die besonders groß und durchsichtig sind, wie die der Seeigel und des Pferdespulwurmes, den ganzen Verlauf des interessanten Befruchtungsvorgangs in lückenloser Folge genau studieren können.
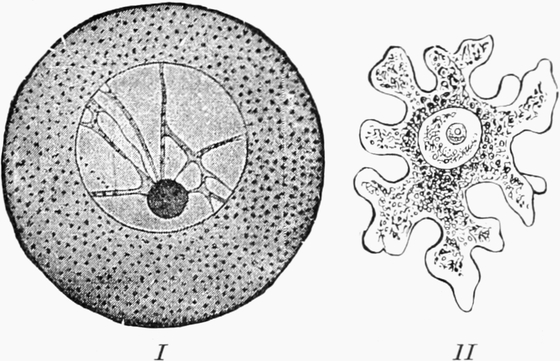
Fig. 92.
Eizellen
.
I
Runde Eizelle eines Seeigels. Nach H
ERTWIG
.
II
Amöboide Eizelle eines Kalkschwammes. Nach H
AECKEL
.
Wie wir bereits sahen, sind die männlichen und weiblichen Geschlechtszellen überaus verschieden differenziert. Während die Eier fast immer große runde oder amöboide Zellen vorstellen, mit einem bläschenförmigen Kern und sehr viel Protoplasma, das die Bildungsstoffe für die weitere Entwicklung enthält, sind die Spermatozoen im Verhältnis zu der Größe der Eier äußerst winzig, denn ihnen fehlt die ganze große Masse des passiven Nähr- oder Dottermaterials, das den Protoplasmakörper der Eizelle so umfangreich macht. Es liegt hier offenbar eine praktische Anpassungstatsache vor, die eine Arbeitsteilung von Spermatozoon und Eizelle zum Ausdruck bringt. Wenn die Eizelle eine genügende Menge passiven Nährmaterials besitzt, so kann die Spermatozoenzelle dasselbe entbehren, denn sie macht ja ihre weitere Entwicklung mit der Eizelle vereinigt durch. Auf der anderen Seite hat die Spermatozoenzelle dafür den Vorteil, daß ihre Beweglichkeit, die zum Aufsuchen der Eizelle nötig ist, nicht durch unnötige Massen passiver Stoffe behindert wird. Die Spermatozoen bestehen zum großen Teil aus Kernsubstanz, welche die Hauptmasse des Körpers bildet, und haben nur eine dünne Protoplasmahülle, die sich in den meisten Fällen in eine bewegliche Geißel fortsetzt, welche als „Schwanz“ vom übrigen Körper, dem „Kopf“ unterschieden wird und zur Bewegung des Spermatozoons beim Aufsuchen des Eies dient. Die feinere Struktur der Spermazellen ist, wie die eingehenden Untersuchungen von RETZIUS[181] und BALLOWITZ[182] in neuerer Zeit gezeigt haben, sehr kompliziert, und bei den verschiedenen Tierformen finden sich die mannigfaltigsten Differenzierungen. Die vorstehenden Abbildungen mögen einige Beispiele dafür liefern (Fig. 93), können aber nur in sehr unvollkommener Weise die Feinheit der wirklichen Verhältnisse zum Ausdruck bringen. Es ist, wenn man einen Begriff von der komplizierten Differenzierung im Bau der Spermatozoen gewinnen will, unerläßlich, die herrlichen Tafelfiguren von RETZIUS zu betrachten, deren Durchsicht nicht bloß ein hohes wissenschaftliches Interesse, sondern auch einen ebenso großen ästhetischen Genuß gewährt.
Wenn nun auch bei den weitgehenden Differenzierungen des Spermatozoenkörpers das Protoplasma gegenüber der Kernmasse etwas in den Hintergrund tritt, so sind doch immer die Spermatozoen ebenso wie die Eier vollständige Zellen und enthalten beide wesentlichen Zellbestandteile: Protoplasma und Kern, eine Tatsache, auf die besonderer Nachdruck zu legen ist.
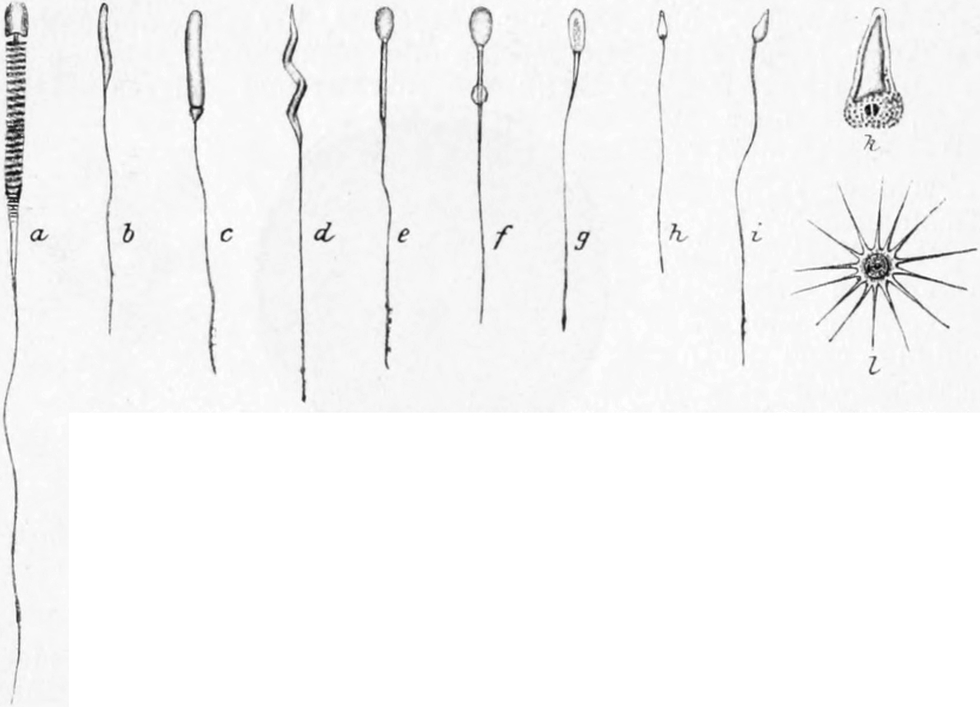
Fig. 93.
Verschiedene Spermatozoenformen
.
a
Von einer
Fledermaus
(Vesperugo nocturna). Nach B
ALLOWITZ
.
b
u.
c
Vom
Frosch
,
d
vom
Finken
,
e
vom
Schaf
,
f
u.
g
vom
Schwein
. Nach S
CHWEIGGER
-S
EIDEL
.
h
Von einer
Meduse
,
i
von einem
Affen
(Cercopithecus),
l
von einer
Krabbe
. Nach C
LAUS
.
k
Vom
Spulwurm
. Nach B
OVERI
.
Ehe die Befruchtung eintritt, in einigen Fällen auch erst während des Beginns der Befruchtung, erfolgt der Reifungsprozeß des Eies, der darin besteht, daß durch zwei hintereinander verlaufende Kernteilungen zwei Knospen, die „Polzellen“ oder „Richtungskörperchen“, gebildet und abgestoßen werden (Fig. 91, p. 236). Die Befruchtung besteht also in der Verschmelzung einer reifen Eizelle mit einer Samenzelle, wobei die letztere die Eizelle aufsucht, durch eigene Lokomotionen, die wir später bei Betrachtung der Bewegungstypen der Zelle kennen lernen werden.
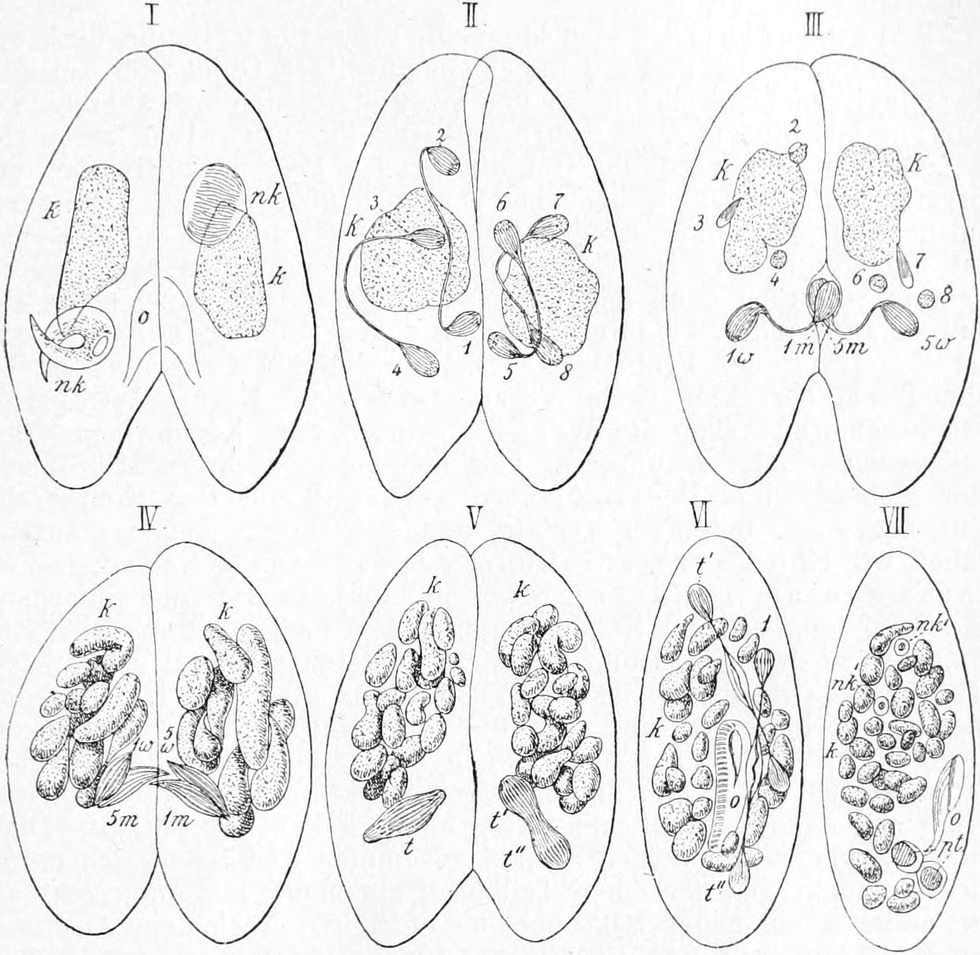
Fig. 94.
Konjugation von Paramaecium in verschiedenen aufeinanderfolgenden Stadien
.
K
Hauptkern,
nk
Nebenkern. I. Beginn der Konjugation. II. Der Nebenkern hat sich zweimal hintereinander geteilt. III. Von den vier Teilstückchen des Nebenkerns gehen drei zugrunde, der vierte teilt sich nochmals in einen männlichen (
m
) und einen weiblichen (
w
) Kern. IV. Während der Hauptkern zerfällt, werden die beiden männlichen Kerne 1
m
und 5
m
ausgetauscht und vereinigen sich mit den weiblichen zu einem Kern, V.
t
, der sich wieder teilt in
t
′ und
t
″. VI.
t
′ und
t
″ teilen sich nochmals. VII. Aus dieser Teilung entstehen die Anlagen des neuen Hauptkerns (
pt
) und des neuen Nebenkerns (
nk
′). Der alte Hauptkern geht zugrunde. Nach R. H
ERTWIG
.
Der Prozeß der Vereinigung zweier Zellen ist ein Vorgang, der sich nicht bloß bei der geschlechtlichen Fortpflanzung findet, sondern sich bis tief in das Reich der einzelligen Organismen hinab verfolgen läßt, bis zu Formen, bei denen von einer geschlechtlichen Differenzierung noch keine Rede ist. Hier, bei den Protisten, ist sie unter dem Namen der „Konjugation“ bekannt. Schon bei den einzelligen schalentragenden Rhizopoden, z. B. bei den mit zierlichem Gehäuse versehenen Difflugien, kommt eine Konjugation vor, indem diese trägen Protoplasmawesen zu zweien, aber auch bisweilen zu dreien, vieren oder noch mehreren dicht aneinander herankriechen, worauf sich ihre Protoplasmaleiber aneinanderlegen und zu einer gemeinschaftlichen Masse verschmelzen, um sich, nachdem eine Vermischung des beiderseitigen Protoplasmas und gewisse Veränderungen der Kerne Platz gegriffen haben, wieder zu trennen[183]. Am genauesten sind die Vorgänge bei der Konjugation in neuerer Zeit von BÜTSCHLI[184], BALBIANI[185], MAUPAS[186], A. GRUBER[187] und R. HERTWIG[188] an Wimperinfusorien studiert worden.
Paramaecium ist eine längliche Infusorienform, die über und über bewimpert ist und ein ungemein günstiges Objekt für zellularphysiologische Untersuchungen der mannigfaltigsten Art abgibt. Die sehr gut mit bloßem Auge wahrnehmbaren Paramäcien lassen sich in faulenden Heuaufgüssen stets in großen Massen kultivieren und vorrätig halten. Dabei beobachtet man häufig, daß in der ganzen Kultur plötzlich eine „Konjugationsepidemie“ auftritt, so daß man fast nur konjugierte Individuen findet. Die Vorgänge bei der Konjugation verlaufen dann folgendermaßen: Zwei Individuen legen sich parallel aneinander, an ihren Mundöffnungen (Fig. 94, I, o) tritt eine Verschmelzung des Protoplasmas zu einer Brücke ein, und es beginnen sehr charakteristische Veränderungen der Kerne. Wie bereits früher bemerkt, haben die Wimperinfusorien zwei Kernformen, einen Makronucleus oder Hauptkern, und einen oder mehrere Mikronuclei oder Nebenkerne. Der Hauptkern geht während der Konjugation ganz zugrunde, indem er zerfällt und sich im Protoplasma auflöst. Haben wir eine Paramäcienform mit nur einem Nebenkern, wie Paramaecium caudatum, wo die Verhältnisse am einfachsten liegen, so teilt sich der Nebenkern in jedem Paarling zweimal hintereinander, so daß vier Teilkerne daraus entstehen. Drei davon lösen sich ebenfalls im Protoplasma auf, der vierte aber teilt sich in jedem Paarling noch einmal und läßt die eine Hälfte (den „männlichen“ Kern) über die Protoplasmabrücke in den anderen Paarling hinübertreten, so daß jeder Paarling jetzt einen „weiblichen“ Kern von sich selbst und einen „männlichen“ vom anderen Paarling enthält. Diese beiden Kerne verschmelzen alsbald zusammen und teilen sich darauf wieder, indem aus der einen Teilhälfte ein neuer Makronucleus, aus der anderen ein neuer Mikronucleus entsteht. Nach dem Austausch der beiderseitigen Kernhälften trennen sich die Paarlinge wieder voneinander, und die Konjugation ist beendet.
Die Konjugation der geschlechtslosen, einzelligen Organismen ist derjenige Vorgang, von dem sich die Befruchtungsvorgänge bei der geschlechtlichen Fortpflanzung phylogenetisch ableiten, denn wir finden bei der Befruchtung im wesentlichen dieselben Tatsachen wie bei der Konjugation. Der Befruchtungsvorgang verläuft übrigens an verschiedenen Objekten nicht ganz gleichartig, wenigstens sind an den beiden Objekten, die bisher am genauesten untersucht worden sind, am Ei der Seeigel und des Pferdespulwurms, einige kleine Verschiedenheiten beobachtet worden, wenn auch alle wesentlichen Momente durchaus übereinstimmen.
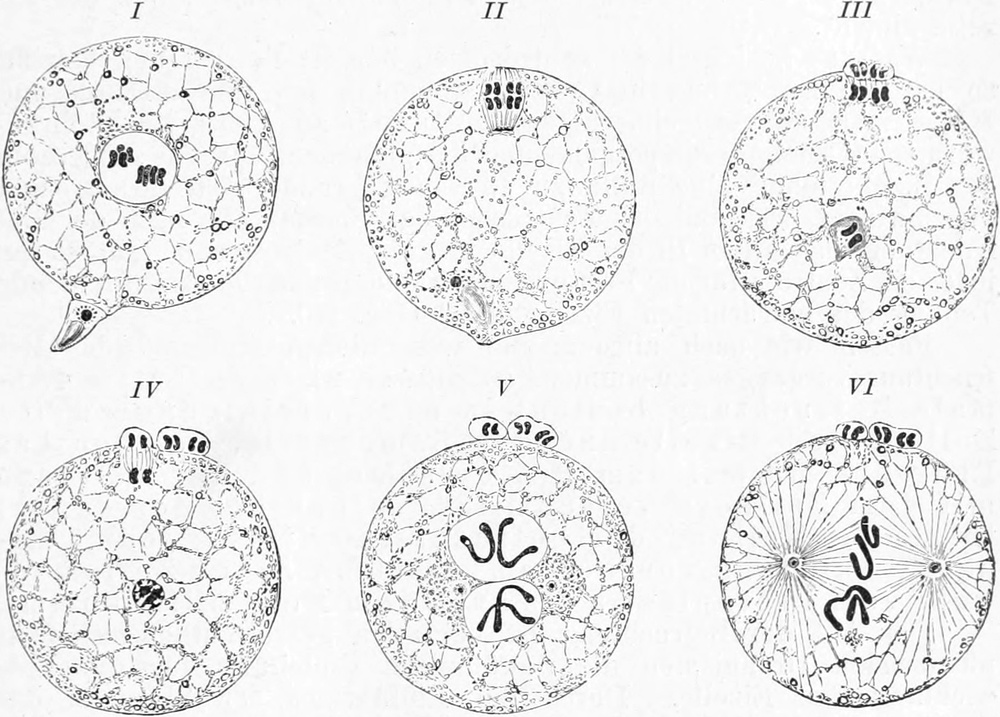
Fig. 95.
Befruchtung des Spulwurmeies (Ascaris megalocephala) in sechs aufeinanderfolgenden Stadien
. Gleichzeitig erfolgt die Reifung des Eies, d. h. die Ausstoßung der Richtungskörperchen (Polzellen). Nach O. H
ERTWIG
.
Fassen wir zuerst die Befruchtung des Spulwurmeies ins Auge, so erfolgt hier die Reifung des Eies, d. h. die Ausstoßung der Richtungskörperchen, erst wenn die Samenzelle in das Ei eindringt. Während die Samenzelle in das Protoplasma des Eies tritt (Fig. 95 I), wandert der bisher in der Mitte gelegene Eikern an die Oberfläche des Eies (Fig. 95 II), wo er sich zweimal hintereinander teilt und zur Ausstoßung der Richtungskörperchen Anlaß gibt (Fig. 95 III u. IV). Inzwischen hat sich das Protoplasma der Samenzelle mit dem Protoplasma der Eizelle vermischt und sich der weiteren Beobachtung entzogen. Der Spermakern dagegen ist in die Mitte des Eies gewandert, wohin ihm nach Angabe der Richtungskörperchen der Eikern von der Peripherie her wieder entgegenkommt. Beide Kerne legen sich jetzt nebeneinander, umgeben sich mit einem durchsichtigen Hof und zeigen nun deutlich je zwei große Chromatinschleifen. Gleichzeitig machen sich zwei Zentrosomen bemerkbar, die sich zu beiden Seiten der Kerne mit einem Strahlenkranz zu umgeben beginnen (Fig. 95 V). Eine Verschmelzung der Kernsubstanzen tritt beim Spulwurm nicht ein, sondern es entwickelt sich, von den beiden Zentrosomen ausgehend, die bekannte Kernteilungsspindel, deren Spindelfasern nach beiden Seiten je eine Chromatinschleife des Eikerns und eine des Spermakerns an die Pole hinziehen, so daß also jede Hälfte der Eizelle einen Kernanteil vom Ei und einen vom Spermatozoon bekommt (Fig. 95 VI). Damit ist die Befruchtung beendet und zugleich die erste Teilung der Eizelle vorbereitet, die nun in der gewöhnlichen Weise erfolgt, indem sich im Aequator der Spindel das Ei durchschnürt, während die Kerne in beiden Hälften ihre Ruheform annehmen.
Die Befruchtung des Seeigeleies zeigt in einzelnen Punkten ein etwas abweichendes Verhalten. Hier ist die Reifung des Eies bereits vollendet, wenn das Spermatozoon eindringt. Ferner verschmelzen hier Eikern und Spermakern vollständig zu einem einzigen Kern, ehe die Teilung in die beiden ersten Furchungshälften der Eizelle eintritt.
Was das Schicksal der Zentrosomen bei der Befruchtung betrifft, so hat BOVERI[189] und in Uebereinstimmung mit ihm WILSON und MATHEWS[190] an Seeigeleiern, sowie MEAD[191] an Eiern von Röhrenwürmern (Chaetopterus pergamentaceus) gefunden, daß das Zentrosom der Eizelle ohne eine Rolle zu spielen zugrunde geht (MEAD) und verschwindet, während das Zentrosom der Spermazelle nach der Befruchtung sich allein in der Eizelle in zwei Zentrosomata teilt, deren jedes ein Zentrum für die Protoplasmastrahlung und die darauf folgende Teilung der befruchteten Eizelle bildet (Fig. 96).
Fassen wir nach alledem die wesentlichen Momente des Befruchtungsvorganges zusammen, so müssen wir sagen: Die normale Befruchtung besteht in der Vereinigung zweier Zellen, der Eizelle und der Samenzelle, bei der das Protoplasma mit dem Protoplasma, und der Zellkern mit dem Zellkern verschmilzt, so daß bei der darauf folgenden Teilung der befruchteten Eizelle jede Teilhälfte Substanz von beiden verschmolzenen Zellen sowohl vom Protoplasma als auch vom Kern mitbekommt.
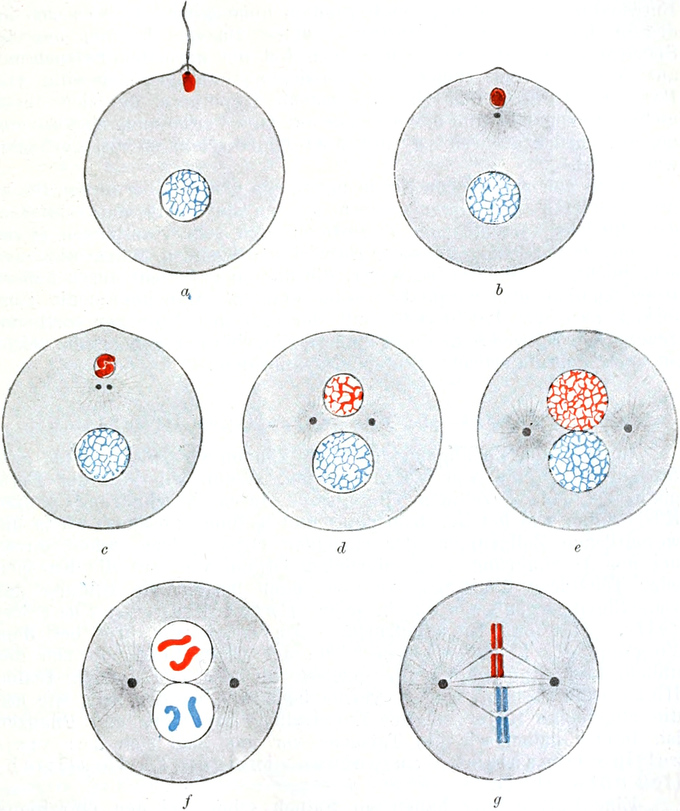
Fig. 96. Schema des Befruchtungsvorganges beim Seeigel in 7 aufeinanderfolgenden Stadien
a
–
g
. Nach B
OVERI
.
⇒ GRÖSSERES BILD
Der Akt der Befruchtung ist bei allen geschlechtlich sich fortpflanzenden Organismen die gewöhnliche Einleitung für die Entwicklung der Eizelle. Durch die Einführung der Substanz des Spermatozoons erhält die Eizelle den Anstoß zu der charakteristischen Reihe von Veränderungen, die ihre Entwicklung ausmachen. Indessen muß hier erwähnt werden, daß bei vielen Pflanzen und wirbellosen Tieren, die sich gewöhnlich geschlechtlich fortpflanzen, unter gewissen Bedingungen auch das unbefruchtete Ei sich zu einem vollkommenen normalen Organismus entwickeln kann, eine Tatsache, die, wie bereits erwähnt, als „Parthenogenese“ bezeichnet worden ist. Häufig folgen, wie z. B. bei gewissen niederen Krebsen, eine große Anzahl von ungeschlechtlichen Generationen, die sich immer wieder aus unbefruchteten Eiern entwickeln, hintereinander, bis endlich eine geschlechtliche Generation aus befruchteten Eiern entsteht. Die Bedingungen, von denen die Parthenogenese abhängig ist, scheinen sehr verschiedener Art zu sein. Unter normalen Verhältnissen sind sie wohl meist in den Nahrungsverhältnissen, der chemischen Zusammensetzung und dem osmotischen Verhalten des umgebenden Mediums zu suchen. Auf letztere Momente weist auch die Tatsache hin, daß es einer ganzen Reihe von Forschern gelungen ist, durch bestimmte chemische Einwirkungen unbefruchtete Eier zu einer parthenogenetischen Entwicklung bis zu gewissen Stadien anzuregen. So hat TICHOMIROFF die Eier von Schmetterlingen durch Eintauchen in konzentrierte Schwefelsäure, DEWITZ Froscheier durch Sublimatbehandlung, KLEBS Algen- und Pilzsporen durch Einwirkung von Salz- und Zuckerlösungen, HERTWIG Seeigeleier durch Strychninlösungen, LOEB Seeigeleier durch Magnesiumchloridlösungen zu parthenogenetischer Entwicklung veranlaßt. Besonderes Interesse aber im Hinblick auf die Theorie der Befruchtung verdient schließlich die kürzlich von H. WINKLER[192] festgestellte Tatsache, daß sich Seeigeleier durch ein Extrakt von Spermatozoen der gleichen Art in Meerwasser, das keine lebendigen Spermatozoen mehr enthält, zur Entwicklung anregen lassen, wenn auch vorläufig bei den Versuchen die Entwicklung nicht über gewisse Stadien hinausging. Daß es sich indessen hierbei um die Wirkung eines Enzyms handle, das im Spermatozoon enthalten sei und auch bei der normalen Befruchtung auf fermentativem Wege die Entwicklung anrege, ist eine von RAPHAEL DUBOIS und PIÉRI gemachte Hypothese, die sich durch nichts stützen läßt und offenbar nur auf eine Verkennung des Enzymbegriffs zurückzuführen ist, mit dem leider schon so viel gesündigt worden ist.
Nach den zahlreichen Erfahrungen, die gerade über diesen Punkt in den letzten Jahrzehnten gemacht worden sind, muß man schließen, daß die Eier verschiedener Tierformen eine sehr verschieden große Neigung zu parthenogenetischer Entwicklung besitzen, indem die einen sehr leicht, die anderen schwerer, die dritten gar nicht durch äußere Einwirkungen dazu veranlaßt werden können. Man könnte die Tierformen nach der Leichtigkeit, mit der sich ihre Eier zur parthenogenetischen Entwicklung durch äußere Eingriffe anregen lassen, leicht zu einer kontinuierlichen Stufenleiter anordnen.
4. Die Entwicklung des vielzelligen Organismus.
Entwicklung im allgemeinen Sinne können wir definieren als eine fortlaufende Reihe von Veränderungen. Wenn wir von der Fortpflanzung des vielzelligen Organismus durch Abschnürung ganzer Körperteile, wie bei der Knospung und Teilung, absehen, wo ja die wesentlichen Zellgruppen der einzelnen Organsysteme schon direkt bei der Abschnürung vom elterlichen Organismus auf die Knospen oder Teilstücke übertragen werden, dann besteht die Bildung des vielzelligen Organismus nur in seiner Entwicklung aus der Eizelle. Mag das Ei unbefruchtet sich entwickeln, wie bei dem Vorgange der „Parthenogenese“, die der uralten Legende von der unbefleckten Empfängnis für gewisse niedere Tiere einen realen Hintergrund verleiht, mag es vorher befruchtet worden sein, wie das die allgemeine Regel bei der Entwicklung der Tiere und Pflanzen ist, immer haben wir die Tatsache vor uns, daß sich der vielzellige Organismus aus einer einzigen Zelle allmählich entwickelt.
Eine Entwicklung haben wir freilich schon bei den einzelligen Organismen, aber hier läuft der ganze Entwicklungskreis an einer einzigen Zelle ab. Immerhin bildet die Entwicklung der Protisten ein interessantes Analogon zu der Entwicklung der vielzelligen Organismen, der Tiere und Pflanzen. Bei den niedrigsten Formen, wie z. B. den Amöben, ist die Entwicklung noch mit dem bloßen Wachstum identisch. Eine Amöbe verändert sich nur, indem sie an Masse zunimmt und sich dann teilt. Die Teilhälften beginnen wieder zu wachsen, bis sie so groß geworden sind, daß sie sich wieder teilen. Der ganze Entwicklungskreis der Amöbe besteht im Wachstum bis zur Zellteilung. Wir sehen also, Wachstum und Zellteilung sind die einfachsten Elemente, welche die Entwicklung erfordert, und in der Tat gibt es in der ganzen lebendigen Welt keine Entwicklung ohne Wachstum und Zellteilung. Eine in komplizierteren Formveränderungen sich äußernde Entwicklung finden wir aber bereits bei allen den Protisten, die sich durch Sporenbildung fortpflanzen. In diesem Falle müssen die Sporen, die ja der Mutterzelle durchaus unähnlich sind, erst eine Reihe von Formveränderungen durchmachen, bis sie der Mutterzelle gleich werden. Die Entwicklungsgeschichte der Protisten ist in neuerer Zeit bei einigen Gruppen genauer studiert worden. So haben RHUMBLER[193] von der Infusoriengattung Colpoda, und L. PFEIFFER[194], LABBÉ[195], LAVERAN[196], GRASSI[197] und R. HERTWIG[198] von der Sporozoengattung Coccidium die Entwicklungsgeschichte mit großer Mühe und Geduld verfolgt. Als Beispiel kann uns der von R. HERTWIG ermittelte Entwicklungskreis des Coccidium Schubergi dienen, einer Protistenform, die in den Darmepithelzellen der Tausendfüßergattung Lithobius parasitär lebt. Die nebenstehende Fig. 97 zeigt in den römischen Zahlen von I–XX den Ablauf der ganzen Entwicklung. I zeigt das Eindringen der aus einer Cyste (XX) entleerten Sporen in die Darmepithelzellen von Lithobius. II, III, IV sind Entwicklungsstadien, welche die eingedrungenen Sporen in den Darmepithelzellen durchmachen. Sie wachsen hier zu kugelförmigen Zellen (IV) heran, die dann austreten und durch Zerklüftung der Kernsubstanz und Abgrenzung des Protoplasmas um die Kernpartikel zur Vielzellbildung führen (V–VII), wobei wiederum Sporen (VIII–X) frei werden. Diese Sporen dringen wiederum in Epithelzellen ein und differenzieren sich zu weiblichen und männlichen Sporen (XI a und XII a). Während aus den weiblichen Sporen sich befruchtungsfähige Eizellen entwickeln (XI a, b, c), gehen aus den männlichen wiederum durch Kern- und Zellzerfall zahlreiche längliche Schwärmsporen hervor (XII a, b, c, d, e), die dann die Eizellen befruchten (XIII). Die befruchtete Eizelle selbst umgibt sich dann mit einer dicken Cystenmembran und zerfällt in der Cyste wiederum zu Sporen (XIV–XX), die ihren Entwicklungskreis wieder von vorn beginnen. In ähnlicher Weise kompliziert ist auch die Entwicklung des Malariaparasiten.
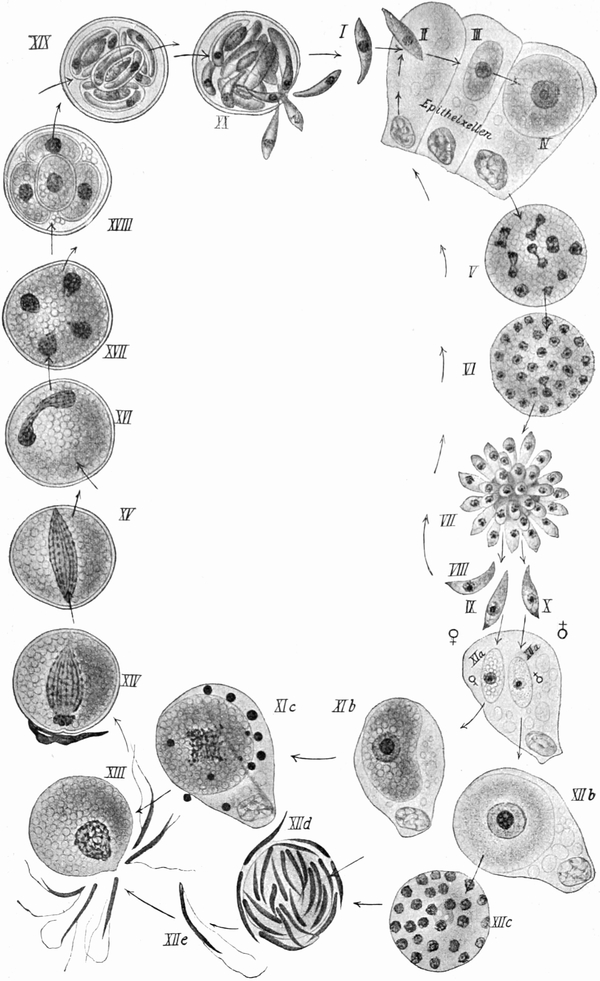
Fig. 97.
Entwicklungsgeschichte von Coccidium Schubergi
. Nach R. H
ERTWIG
.
⇒ GRÖSSERES BILD
Was sich bei den Protisten an einer einzigen Zelle abspielt, das verläuft bei der Entwicklung des vielzelligen Organismus an einer großen Summe von Zellen. Nach unseren Betrachtungen über die Fortpflanzung kann die Entwicklung des vielzelligen Organismus aus dem einzelligen Ei nicht anders geschehen als durch fortgesetzte Zellteilung. Dabei aber spielen zwei Momente eine wichtige Rolle, das ist einerseits die Tatsache, daß sich die aus der Teilung der Eizelle hervorgehenden Teilungsprodukte nicht wie bei den meisten Protisten voneinander trennen, sondern miteinander im Zusammenhang bleiben, und anderseits die Tatsache, daß die Teilungsprodukte einander nicht immer gleich sind, sondern durch inäquale Teilung zwei voneinander und von der Mutterzelle ganz verschiedene Zellformen bilden können. Auf diese Weise wird nicht nur die Entstehung eines vielzelligen Organismus überhaupt, sondern die Entstehung eines vielzelligen Organismus mit Differenzierung der verschiedenartigsten Gewebe und Organe ermöglicht. Wäre nur das erste Moment wirksam und das zweite nicht, dann würde ein Zellenstaat resultieren, bestehend aus vielen Zellen, die aber alle einander gleich wären. Auch solche Organismen existieren tatsächlich im Reiche der Protisten (Fig. 98) und werden als Zellkolonien aufgefaßt, die vollkommen republikanische Verfassung haben, d. h. in denen jede Zelle der anderen genau gleichgestellt ist. Diese Formen bilden die Zwischenglieder zwischen den wirklich einzelligen Organismen und den Tieren oder Pflanzen. Im Körper der Tiere und Pflanzen sind, selbst bei den niedrigsten, die Zellen nicht mehr alle gleich, und diese Differenzierung, durch die überhaupt nur die Entwicklung eines komplizierter gebauten Zellenstaates ermöglicht wird, beruht auf der Wirksamkeit des zweiten Moments, der inäqualen Zellteilung. Also Zellteilung, und zwar sowohl äquale wie inäquale, und Zusammenbleiben der Zellen sind die Faktoren, welche die Entwicklung eines differenzierten Zellenstaates hervorbringen.
Fig. 98.
A
Eudorina elegans
.
B
Magosphaera planula
. Nach H
AECKEL
. Zwei vielzellige Organismen, aus gleichartigen Zellen bestehend.
Wir können nicht auf die speziellen Vorgänge in der individuellen Entwicklung der verschiedenen Tiere und Pflanzen näher eingehen und müssen zu diesem Zwecke auf die ausführlichen Werke von HAECKEL[199], HERTWIG[200], BONNET[201], KORSCHELT und HEIDER[202] verweisen, welche die Embryologie als selbständige Wissenschaft behandeln. Dagegen müssen wir noch einen Blick auf jenes wichtige Gesetz werfen, das, wie wir schon sahen, der individuellen Entwicklung ihre bestimmten Wege vorschreibt, auf das „biogenetische Grundgesetz“.
Schon KARL ERNST VON BAER, der Begründer der Embryologie, hatte gefunden, daß in der Embryonalentwicklung ganz verschiedener Tierformen Entwicklungsstadien vorkommen, die sich täuschend ähnlich sehen und nach DARWINs epochemachender Tat sprach bereits FRITZ MÜLLER[203] mit klaren Worten die Tatsache aus, daß die Entwicklungsgeschichte des Individuums eine kurze Wiederholung des ganzen Entwicklungsganges vorstellt, den die betreffende Art während der Entwicklung durchgemacht hat. Es war dann HAECKELs Verdienst, das „biogenetische Grundgesetz“ schärfer formuliert und das Bestehen eines Zusammenhanges zwischen der ontogenetischen und phylogenetischen Entwicklungsreihe betont zu haben. HAECKEL[204] zeigte nämlich, daß die individuelle Entwicklung oder Ontogenie nur in groben Umrissen eine Wiederholung oder „Palingenie“ der Stammesentwicklung oder Phylogenie vorstellt, daß aber vielfach diese Wiederholung verwischt oder gefälscht wird durch das Auftreten von Eigenschaften, die nicht in der phylogenetischen Entwicklungsreihe der betreffenden Form vorhanden waren, und die er deshalb als Ausdruck einer Fälschungsentwicklung oder „Cenogenie“ bezeichnete. Wir haben also in der individuellen Entwicklungsreihe einer jeden Organismenform zweierlei Bestandteile zu unterscheiden, einerseits die palingenetischen Bestandteile, welche die Stammesentwicklung der betreffenden Form kurz rekapitulieren, und anderseits die cenogenetischen Bestandteile, die erst durch Anpassung nachträglich entstanden sind und den Verlauf der palingenetischen Vorgänge abgeändert und verwischt haben.
Die Erklärung für diese Tatsachen liegt zweifellos in den beiden Momenten, die, wie wir gesehen haben, die ganze Entwicklung des organischen Lebens beherrschen, in dem formerhaltenden Moment der Vererbung und in dem formverändernden Moment der Anpassung. Welche Mechanismen freilich im einzelnen der Wiederholung der Ahnenformen in der Ontogenie und welche der Abänderung und Umformung derselben zugrunde liegen, welche chemischen und physikalischen Faktoren in beiden Momenten ihren Ausdruck finden, das im einzelnen zu untersuchen, bleibt noch der zukünftigen entwicklungsphysiologischen Forschung vorbehalten. Jedenfalls können wir mit HAECKEL[205] das biogenetische Grundgesetz kurz folgendermaßen formulieren:
„Die Keimesentwicklung ist ein Auszug der Stammesentwicklung; um so vollständiger, je mehr durch Vererbung die Auszugsentwicklung beibehalten wird; um so weniger vollständig, je mehr durch Anpassung die Fälschungsentwicklung eingeführt wird.“
III. Der Energieumsatz.
A. Die allgemeinen Gesetze der Energetik.
Seit alter Zeit hat die Naturwissenschaft verschiedene „Kräfte“ unterschieden, welche die Bewegungsvorgänge in der Natur hervorbringen sollen. „Kraft“ wurde dabei in naturwissenschaftlichem Sinne als ein Ausdruck für die „Ursache“ einer Bewegung definiert, denn man wußte von einer Kraft nichts anderes zu sagen, als daß sie Bewegung hervorbringen sollte. So war der Begriff der „Kraft“ nichts anderes als eine Form des alten mystischen Ursachenbegriffs. Sinnlich wahrzunehmen ist keine Kraft, sinnlich wahrzunehmen sind nur Bewegungen. Es liegt hieran, daß man seit frühen Zeiten schon da, wo man verschiedene Bewegungsformen sah, auch verschiedenartige Kräfte annahm. So kam es, daß mit der Zeit eine Menge von Kräften unterschieden wurde, die schlechterdings nicht miteinander auf die gleiche Stufe gestellt werden konnten. Man sprach von Schwerkraft, von Muskelkraft, von Willenskraft etc. Dieser Zustand ist noch jetzt nicht ganz vorüber. Indessen hat die moderne Physik und Chemie doch mit dem Begriff der „Kraft“ allmählich etwas aufgeräumt und benutzt das Wort nur noch als Bequemlichkeitsausdruck, nicht aber als Erklärungsmoment. Statt dessen hat man für Erklärungszwecke in neuerer Zeit einen anderen der Erfahrung entnommenen Begriff in die Mechanik der Bewegungsvorgänge eingeführt, der nichts Mystisches enthält, das ist der Begriff der „Energie“.
1. Die Formen der Energie.
Der Begriff der Energie hat in der neueren Physik eine ganz bestimmte Bedeutung angenommen. Wir können Energie kurz definieren als Arbeitsleistung oder Arbeitsfähigkeit. Die Vorgänge oder Zustände körperlicher Systeme werden also betrachtet unter dem Gesichtspunkt, ob und welcherlei Arbeit sie leisten oder zu leisten imstande sind und aus welcherlei Arbeitsleistungen sie resultieren. Diese Arbeit kann sehr verschiedener Art sein, und je nach ihr unterscheiden wir eine größere Anzahl von Energieformen durch eigene Benennungen. Zahl und Einteilung der Energieformen sind freilich bis zu einem gewissen Grade willkürlich, aber alle Energieformen, die wir kennen oder die wir aufstellen wollen, unterliegen einer Scheidung in zwei Gruppen, je nachdem sie Arbeit selbst, d. h. kinetische Energie (Energie der Bewegung), oder Arbeitsfähigkeit, d. h. potentielle Energie (Energie der Lage) repräsentieren.
Daß jedem bewegten System ein gewisser Energiewert zukommt, ist ohne weiteres verständlich, denn die Bewegung eines materiellen Systems ist ja direkt eine Arbeitsleistung. Daß aber auch ein ruhendes System einfach durch seine Lage einen bestimmten Energiewert repräsentieren kann, mag uns das Beispiel der Gravitationsenergie zeigen. Befindet sich ein Stein in labiler Gleichgewichtslage auf der Mauerkante eines Turmes und wird er durch einen minimalen Anstoß ins Wanken gebracht, so fällt er zur Erde. Dabei leistet er eine Arbeit, die in Bewegung und Wärme zum Ausdruck kommt und deren Größe ganz von seiner Lage abhängig ist. Er leistet mehr Arbeit, wenn er aus größerer, weniger, wenn er aus geringerer Höhe herabfällt. Seine Lage, in diesem Beispiel seine Entfernung vom Erdmittelpunkt, repräsentiert einen ganz bestimmten Arbeitswert und kann jeden Augenblick, wenn die äußeren Bedingungen hergestellt sind, direkt zur Arbeitsleistung benutzt werden. Der Stein enthält also in der betreffenden Lage Energie in potentia oder potentielle Energie.
Beide Arten von Energie, kinetische (aktuelle, Energie der Bewegung) sowohl wie potentielle (Spannkraft, Energie der Lage) finden wir in den verschiedensten Gewändern. Es ist vielleicht zweckmäßig, einen kurzen Blick zu werfen auf einige Beispiele der wichtigeren Energieformen, die wir in den Vorgängen und Zuständen der Körperwelt unterscheiden können.
Beispiele von Energieformen:
Chemische Energie.
Kohäsionsenergie.
Osmotische Energie.
Energie der Wärme.
Mechanische Energie.
Gravitationsenergie.
Energie des Lichts.
Energie der Elektrizität.
Energie des Magnetismus.
Die Naturwissenschaft stellt sich die Körperwelt zusammengesetzt vor aus außerordentlich kleinen Teilchen und nennt diejenigen Teilchen, die nicht mehr geteilt werden können, ohne ihre Eigenschaften zu verändern, „Moleküle“, diejenigen, welche die Moleküle zusammensetzen und früher als überhaupt nicht weiter teilbar galten, „Atome“. Von dieser Vorstellung aus verstehen wir unter „chemischer Energie“ diejenige Energieform, die in der gegenseitigen Anziehung der Atome zum Ausdruck kommt. Die chemische Energie ist potentiell, soweit die Atome ungebundene Affinitäten haben und keine Gelegenheit, einander zu fesseln: sie wird aktuell im Moment, wo eine Verbindung zwischen zwei Atomen erfolgt. Werden einerseits die Atome durch die chemische Energie zu Molekülen vereinigt, so ist es anderseits die Kohäsionsenergie, welche die Moleküle untereinander zu großen Körpermassen vereinigt. Auch die Kohäsionsenergie kann als potentielle und kinetische Energie auftreten, ganz analog der chemischen. Als osmotische Energie bezeichnet man die Energie, welche durch die Bewegung der Moleküle in Flüssigkeiten oder Gasen repräsentiert wird und welche der gegenseitigen Durchdringung und Mischung von Flüssigkeiten und Gasen, d. h. den Diffusionsvorgängen, zugrunde liegt. Da sie in einer Bewegung und Wanderung der Moleküle besteht, ist sie kinetische Energie. Ebenfalls eine kinetische Energieform ist die Energie der Wärme, die in einer fortschreitenden Bewegung der Moleküle besteht. Nach den besonders von CLAUSIUS entwickelten Vorstellungen sind beispielsweise in einer Flüssigkeit oder in einem Gase die Moleküle in um so intensiverer Bewegung begriffen, je höher die Temperatur ist. Dabei stoßen sie fortwährend aneinander an, prallen wieder ab etc., so daß ein Gewimmel entsteht, das man passend durch den Vergleich mit einem Mückenschwarm anschaulich zu machen gesucht hat. Aber auch die Atome innerhalb eines Moleküls sind in fortwährenden Schwingungen begriffen, nur daß dieselben hier immer um beständige Gleichgewichtslagen sich bewegen. Man spricht daher in diesem Falle von „intramolekularer Wärme“. Die groben Bewegungen der großen Körpermassen, die durch Zug, Druck, Stoß etc. veranlaßt werden, sind als mechanische Energie bezeichnet worden. Die gegenseitige Anziehung der großen Massen, die Anziehung von Sonne und Erde, von Erde und Mond, die Anziehung, die den hochgeworfenen Stein zwingt, wieder auf die Erde zurückzukehren, ist die Energie der Schwere oder die Energie der Gravitation. Auch sie kann potentiell sein wie im oben angeführten Beispiel, wenn der Stein in einiger Höhe über dem Erdboden liegt, aber sie wird aktuell, wenn der Stein fällt. Das Verhältnis ist immer dasselbe, wie zwischen den Atomen, so auch zwischen den Molekülen, so auch zwischen den großen Massen. Ferner sei genannt die Energie des Lichts als diejenige aktuelle Energie, welche die Lichtschwingungen repräsentieren, dann die elektrische Energie, die als kinetische Energie in der Form des elektrischen Stromes, als potentielle Energie in der Form der statischen Elektrizität auftritt, und endlich der Magnetismus, der ebenfalls sowohl als kinetische wie als potentielle Energieform auftreten kann.
Ueber das Verhältnis und die Beziehungen mancher von diesen Energieformen zueinander ist bisher noch nicht genügend Klarheit verbreitet worden. Wenn es als zweckmäßig erscheinen sollte, so wäre es durchaus berechtigt, noch mehr Energieformen zu unterscheiden oder einige der bekannten miteinander zu einer Form zu vereinigen, denn diese sämtlichen Unterscheidungen, daran müssen wir uns immer wieder erinnern, haben nur methodischen Wert und sind lediglich zu dem Zweck getroffen, bestimmte Bezeichnungen für bestimmt charakterisierte Arbeitsleistungen oder Arbeitsfähigkeiten zu gewinnen, die wir in der Welt beobachten. Es wäre verkehrt, wollte man die verschiedenen Energieformen als ebensoviele verschiedenartige, selbständige und unveränderliche Tätigkeiten oder Fähigkeiten einer hypothetischen Materie betrachten. Wie falsch das wäre, zeigt uns am besten die Tatsache, daß sich eine Energieform in die andere verwandeln läßt und in der Natur fortwährend verwandelt wird.
2. Das Gesetz von der Erhaltung der Energie. „Erster Hauptsatz.“
Die überaus wichtige Tatsache, daß die verschiedenen Energieformen ineinander verwandelbar sind, findet bekanntlich ihren Ausdruck in dem von ROBERT MAYER 1842 zuerst ausgesprochenen und von HELMHOLTZ 1847 selbständig eingehender begründeten Gesetz von der Erhaltung der Energie, das für unsere ganze moderne Naturauffassung grundlegend geworden ist, und dessen Erkenntnis wohl die größte Tragweite gewonnen hat, die je eine Erkenntnis hatte.
Das Gesetz von der Erhaltung der Energie beherrscht alles Geschehen in der Natur, es bildet den „ersten Hauptsatz“ der Energetik. Wie wir bereits früher sahen, besagt es, daß nirgends in der Welt Energie entsteht oder verschwindet, daß die Summe von Energie in der ganzen Welt eine konstante ist, ebenso wie das Gesetz von der Erhaltung des Stoffes die gleiche Konstanz von der Menge des Stoffes aussagt, denn wir dürfen nicht vergessen, daß die stoffliche und die energetische Betrachtungsweise eines Vorganges oder Zustandes eben nur verschiedene Betrachtungsweisen des gleichen Vorganges oder Zustandes sind, die wir nur unterscheiden nach den Mitteln, mit denen wir denselben untersuchen. Wo uns eine gewisse Menge von Energie zu verschwinden oder zu entstehen scheint, da geht sie in Wirklichkeit nur in eine andere Form oder Modifikation über. Das oben angeführte Beispiel vom fallenden Stein zeigt uns sehr anschaulich diese Umwandlung. Um den Stein auf den Turm zu heben, ist eine ganz bestimmte Menge von kinetischer Energie notwendig, um so mehr, je höher der Stein gehoben wird. Diese selbe Menge von Energie steckt in dem Stein als potentielle Energie, solange er in der betreffenden Höhe liegt, sie geht aber sofort wieder in die aktuelle Energie der Bewegung und der Wärme über, sobald der Stein fällt, und zwar wird beim Fall sukzessive je tiefer der Stein sinkt, um so mehr potentielle Energie in aktuelle verwandelt, bis der Stein zu Boden gefallen ist. Dann hat ihn die ganze Energie, die ihm beim Heben vom Erdboden zugeführt wurde, wieder verlassen. Oder um noch ein anderes Beispiel zu nennen: Leiten wir durch ein Gefäß mit Wasser einen elektrischen Strom, so scheint die elektrische Energie verloren zu gehen. Sie verschwindet aber in Wirklichkeit nicht, denn wir sehen, daß die Moleküle des Wassers in ihre Wasserstoff- und Sauerstoffatome zerlegt werden, die sich in ihrem gasförmigen Zustande an den beiden Polen der elektrischen Leitungsdrähte ansammeln und daß dabei gleichzeitig Wärme entsteht. Der elektrische Strom hat also eine Arbeit geleistet, indem er die Atome des Wassermoleküls voneinander getrennt und außerdem Wärme geliefert hat. Die frei gewordenen Wasserstoff- und Sauerstoffatome haben aber chemische Affinität zueinander, es ist also bei dem Experiment nur die aktuelle Energie des elektrischen Stromes verwandelt worden in die potentielle Energie der chemischen Affinität und in Wärme.