Zweites Kapitel. Von der lebendigen Substanz.
Reading edition
I. Die Zusammensetzung der lebendigen Substanz.
A. Die Individualisation der lebendigen Substanz.
1. Die Zelle als Elementarorganismus.
2. Allgemeine und spezielle Zellbestandteile.
3. Mehrkernige Zellen und Syncytien.
B. Die morphologische Beschaffenheit der lebendigen Substanz.
1. Form und Größe der Zelle.
2. Das Protoplasma.
a) Die geformten Bestandteile.
b) Die Grundsubstanz des Protoplasmas.
3. Der Zellkern oder Nucleus.
a) Die Gestalt des Zellkerns.
b) Die Substanzen des Zellkerns.
c) Die Struktur der Kernsubstanzen.
C. Die chemischen Eigenschaften der lebendigen Substanz.
1. Die organischen Elemente.
2. Die chemischen Verbindungen der Zelle.
a) Die Eiweißkörper.
b) Die Kohlehydrate.
c) Die Fette.
d) Die anorganischen Bestandteile der lebendigen Substanz.
e) Die Verteilung der Stoffe auf Protoplasma und Kern.
D. Die physikalischen Eigenschaften der lebendigen Substanz.
1. Die Konsistenz der lebendigen Substanz.
2. Membranfunktionen und osmotische Eigenschaften der Zelle.
3. Das spezifische Gewicht der lebendigen Substanz.
4. Die optischen Eigenschaften der lebendigen Substanz.
II. Lebendige und leblose Substanz.
A. Organismen und anorganische Körper.
1. Morphologische Unterschiede.
2. Genetische Unterschiede.
3. Physikalische Unterschiede.
4. Chemische Unterschiede.
B. Lebendige und leblose Organismen.
1. Leben und Scheintod.
2. Leben und Tod.
GALEN, der Vater der Physiologie, hatte bereits klar und deutlich die Notwendigkeit erkannt, daß für die Erklärung der Lebensäußerungen irgend eines Organs die genaue Kenntnis seiner anatomischen Verhältnisse unbedingte Voraussetzung sei, und diese wichtige Forderung hat die Physiologie bis auf den heutigen Tag zu ihrem größten Vorteil aufrecht erhalten. Jede physiologische Untersuchung muß als erste unentbehrliche Vorbedingung die stoffliche Kenntnis des Substrats betrachten, dessen Lebensäußerungen sie ins Auge faßt. Das gilt für die allgemeine Physiologie nicht minder wie für die spezielle. Es wird demnach die Betrachtung der lebendigen Substanz, d. h. ihrer Zusammensetzung und ihrer Unterschiede gegenüber der leblosen Substanz den Ausgangspunkt der allgemeinen Physiologie bilden müssen.
I. Die Zusammensetzung der lebendigen Substanz.
Der Versuch, das geheimnisvolle Dunkel zu lüften, das die Mysterien der lebendigen Substanz umhüllt, der Substanz, die von selbst sich ernährt und atmet, sich bewegt und wächst, sich fortpflanzt und entwickelt, hat von alters her einen eigenen Reiz auf die Gemüter grübelnder Denker ausgeübt. In naiver Weise glaubte das Altertum aus der Vermischung gewisser Stoffe die Substanz der lebendigen Körper erklären zu können. So stellte sich HIPPOKRATES vor, der normale menschliche Körper bestehe aus Blut, Schleim und Galle, die in bestimmten Verhältnissen miteinander gemischt seien. Das Mittelalter, das die Rätsel der Natur sämtlich mit Hilfe der vielmächtigen Alchymie zu lösen suchte, glaubte dem Geheimnis der lebendigen Substanz schon auf der Spur zu sein. Wie tief man in diesem Wahn befangen war, zeigen die vielen Versuche des Mittelalters, lebendige Substanz künstlich in der schwarzen Küche darzustellen. Die gespannte Erwartung, mit der im phantastischen Halbdunkel seines Laboratoriums, umgeben von seltsamen Adepten und abenteuerlichen Apparaten, der mittelalterliche Alchymist den Homunculus jeden Augenblick fertig der Retorte oder dem Schmelztiegel entsteigen zu sehen hoffte, stellt einen Zug vor, der nicht wenig charakteristisch ist für die Entwicklungsstufe, auf der die Wissenschaft in jenen Jahrhunderten stand. Aber wie stolz wir auch auf unsere moderne Wissenschaft zu sein pflegen, wir haben nicht das Recht, mit Spott auf diese Versuche des Mittelalters herabzublicken, wenn wir daran denken, daß seit jener Zeit bis in unser Jahrhundert hinein die Versuche fortgedauert haben, zwar nicht den Menschen selbst, den Homunculus, wohl aber die einfachsten Formen lebendiger Substanz künstlich herzustellen. Und doch gleichen all diese Versuche nur dem Unternehmen eines Mannes, der ein kompliziertes Uhrwerk zusammenzusetzen versucht, ohne die dazu notwendigen Teile zu kennen. In der Tat, wie einfach auch das Problem der künstlichen Darstellung lebendiger Substanz dem Mittelalter noch erschien, der Fortschritt nüchternen Denkens und kritischer Forschung hat immer mehr und mehr gezeigt, wie weit wir vorläufig sogar noch von der Kenntnis ihrer feineren Zusammensetzung entfernt sind. Wie sollte es aber möglich sein, eine Substanz chemisch darzustellen, deren chemische Zusammensetzung gar nicht bekannt ist! Das Augenmerk der modernen Forschung hat sich daher mehr und mehr darauf gerichtet, die Zusammensetzung der lebendigen Substanz zu erforschen, und die Erfolge sind nicht ausgeblieben. Die moderne Forschung hat tiefe Blicke getan in die Formbildung, in die physikalischen Verhältnisse, in die feinere Struktur und in die chemische Konstitution der lebendigen Substanz, und unermüdliche Geister sind beschäftigt, den Schleier, der diese Rätsel umhüllt, noch weiter zu lüften.
A. Die Individualisation der lebendigen Substanz.
1. Die Zelle als Elementarorganismus.
Werfen wir einen Blick auf die organische Welt, welche die Erdoberfläche bewohnt, so finden wir, daß die lebendige Substanz nicht eine einzige zusammenhängende Masse bildet, sondern daß sie in einzelne organische Individuen geschieden ist. Der Begriff des organischen Individuums ist nicht ganz leicht zu definieren, und viele Forscher, in neuerer Zeit besonders HAECKEL[21], haben sich schon bemüht, ihm eine allgemein gültige Form zu geben. Er entstand in alter Zeit durch Abstraktion vom Menschen und den höheren Tieren, die als einheitliche, voneinander unabhängige, lebendige Wesen erschienen. Aber wie bei allen jenen alten Begriffen, deren Bildung einem beschränkten Kreise von Erfahrungen entsprungen ist, und deren Inhalt sich später mehr und mehr erweiterte, so ist auch bei dem Begriff des Individuums die ursprüngliche Form zu eng geworden und bedarf einer Erweiterung, die den Begriff auf einen größeren Kreis von Erfahrungen anwendbar macht.
Die ursprüngliche Vorstellung, die das Wesen des Individualbegriffs ausmachte, war die Vorstellung der Unteilbarkeit. Danach wäre ein Individuum ein einheitliches Ganzes, das sich nicht weiter teilen läßt, ohne seine charakteristischen Eigenschaften zu verlieren. Solange man nur den Menschen, die Wirbeltiere und allenfalls noch die Insekten dabei im Auge hatte, stieß in der Tat diese Definition auf keine Schwierigkeiten, denn ein Wirbeltier oder Insekt läßt sich nicht durch Teilung in mehrere selbständige Individuen zerlegen. Indessen wenn man etwas tiefer in der Tierreihe hinabsteigt, oder wenn man den Begriff auch auf das Pflanzenreich anwenden will, machen sich bald Schwierigkeiten bemerkbar.
Es gibt im Süßwasser unserer Teiche und Seen einen eigentümlichen Vertreter der großen Familie der Nesseltiere, den Süßwasserpolypen Hydra. Dieser kleine, ungefähr zentimeterlange Polyp mit seinem dünnen, schlauchförmigen Körper, an dem sich mehrere lange fadenförmige Fangarme befinden (Fig. 2 A), hat schon bald nach der Entdeckung des Mikroskops die Aufmerksamkeit der Beobachter zu fesseln begonnen. Man fand nämlich, daß dieses merkwürdige Wesen sich durch einen queren Schnitt in zwei Hälften zerlegen läßt, deren jede sich wieder zu einem vollständigen, nur entsprechend kleineren Individuum umformt. Die vordere armtragende Hälfte schließt einfach die Schnittwunde und setzt sich wieder mit dem hinteren Ende fest, die hintere Hälfte dagegen läßt alsbald von den Wundrändern neue Fangarme hervorsprossen, und in kurzer Zeit sind beide Teilstücke wieder vollständige Hydren. Ja, man kann sogar die einzelnen Teilstücke noch weiter teilen und schließlich das ganze Tier in eine große Anzahl kleiner Stücke zerlegen, deren jedes sich wieder zu einem vollständigen Individuum umbildet. In diesem Beispiel ist also das einheitliche Individuum in zwei oder mehrere Individuen geteilt worden. Wäre daher die Unteilbarkeit allein maßgebend für die Entscheidung, ob man ein Individuum vor sich hat oder nicht, dann wäre die Hydra kein Individuum, denn sie läßt sich teilen, ohne daß die Teilstücke die charakteristischen Eigentümlichkeiten des ursprünglichen Tieres verlieren, und dasselbe ist der Fall bei jedem Baum, bei jedem Strauch.
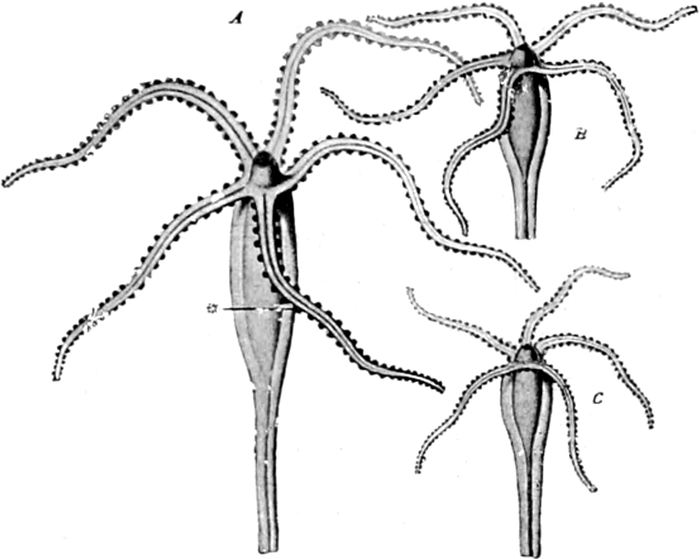
Fig. 2.
Hydra fusca
, Süßwasserpolyp.
A
bei * quer durchgeschnitten,
B
und
C
die beiden Teilstücke haben sich zu zwei vollständigen Individuen regeneriert.
Das Moment der Unteilbarkeit ist also nicht aufrecht zu erhalten für die Definition des Individualbegriffs, sondern nur das Moment der Ungeteiltheit, der Einheit. Solange die Hydra ungeteilt war, bestand sie als Individuum, als Ganzes, als Ungeteiltes, als Einheit. Durch die Teilung ging zwar das ursprüngliche Individuum zugrunde, aber es entstanden zwei neue Einheiten daraus, die, solange sie nicht selbst weiter zerschnitten werden, wirklich vollkommene Individuen vorstellen. Nur das Moment der Einheit kann also maßgebend sein für die Definition des Individualbegriffs, wenn sie in einer so allgemeinen Fassung gegeben werden soll, daß sie für alle speziellen Fälle gültig bleibt. Ein organisches Individuum wäre demnach nichts als eine einheitliche Masse lebendiger Substanz.
Aber in dieser allgemeinsten Form ist die Definition wieder zu weit, denn danach wäre auch jeder kleine Fetzen lebendiger Substanz, den wir von einer lebendigen Zelle unter dem Mikroskop abgeschnitten haben, noch ein Individuum. Wir werden uns indessen nicht entschließen können, einen solchen Fetzen als Individuum zu betrachten, wenn wir sehen, wie jedes Stückchen lebendiger Substanz, das nicht mehr den Wert einer Zelle hat, stets nach einiger Zeit unfehlbar zugrunde geht. Es gehört also zum Begriff des Individuums noch das Moment der Selbsterhaltungsfähigkeit. Somit können wir sagen: ein organisches Individuum ist eine einheitliche Masse lebendiger Substanz, die unter bestimmten äußeren Lebensbedingungen selbsterhaltungsfähig ist.
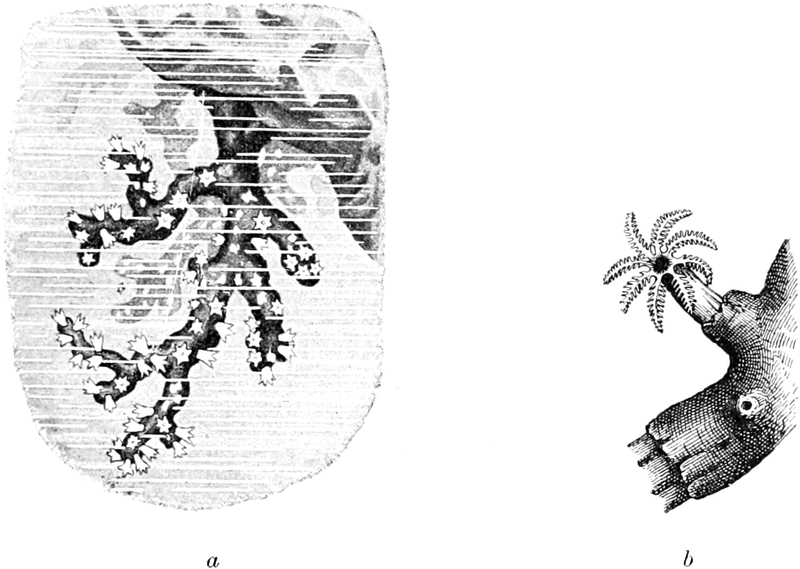
Fig. 3.
Eucorallium rubrum
, Edelkoralle.
a
ein Korallenstock mit vielen Individuen,
b
ein einzelnes Individuum, stärker vergrößert. Nach H
AECKEL
.
Diese Definition findet zunächst Anwendung auf alle einzelnen, freilebenden Organismen, die räumlich voneinander getrennt und nicht künstlich zerteilt sind, also auf alle Organismen in der Form, wie sie in der Natur vorkommen; aber die Definition umfaßt noch mehr als nur räumlich getrennte Organismen, sie umfaßt auch zusammengehörige Gruppen von einzelnen Organismen, deren jeder vom anderen zwar räumlich getrennt sein kann, die aber alle zusammen eine Einheit bilden. Ein Beispiel dafür ist der Ameisenhaufen. Der Ameisenhaufen stellt ein Individuum vor, insofern er ein einheitliches Ganzes ist, in dem die einzelnen Teile, wie die Glieder eines Organismus, einheitlich zusammen arbeiten. Der Ameisenstaat besteht aber seinerseits wiederum aus lauter einzelnen Individuen, aus Männchen, Weibchen, Arbeiterinnen, Soldaten etc., und so sehen wir schon, daß die Individualität von sehr verschiedenem Werte sein kann. Der Ameisenstaat, selbst ein Individuum, umfaßt wieder eine große Menge von Individuen. Wir haben es hier also mit Individualitäten von verschiedenem Grade zu tun. Es erscheint daher zweckmäßig, diese Individualitätsgrade in der Weise zu unterscheiden, daß man die umfassendere Individuenform als ein Individuum höherer Ordnung, die sie zusammensetzenden Individuenformen als Individuen niederer Ordnung bezeichnet. Ganz ähnlich dem Verhältnis zwischen dem Ameisenstaat und der einzelnen Ameise ist das Verhältnis bei den Korallenstöcken. Hier ist der ganze Korallenstock (Fig. 3 a) ein Individuum höherer Ordnung, der einzelne Korallenpolyp (Fig. 3 b) aber ein Individuum niederer Ordnung; der Unterschied gegenüber dem Ameisenhaufen besteht nur darin, daß die Individuen niederer Ordnung hier substantiell untereinander im Zusammenhang stehen.
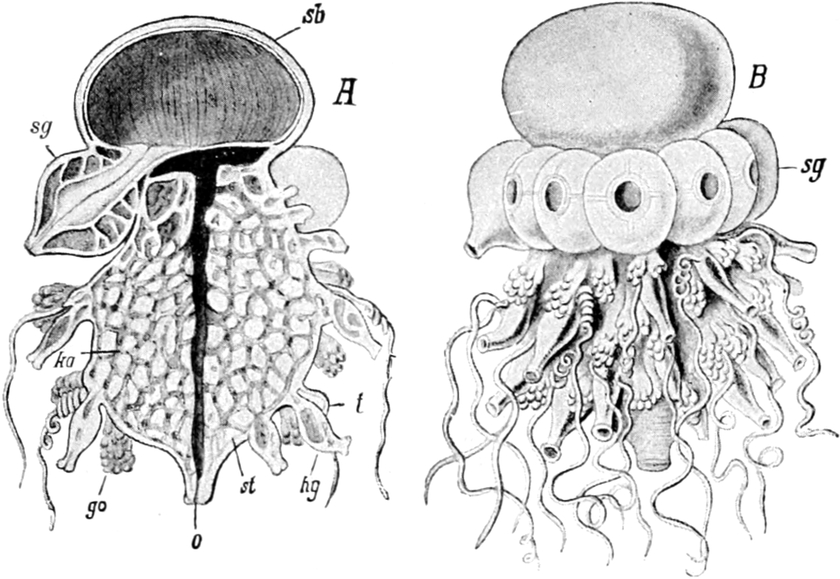
Fig. 4.
Stephalia corona
, eine Siphonophore.
A
Längsschnitt,
B
äußere Ansicht,
sb
Schwimmblase,
sg
Schwimmglocken,
go
Geschlechtstrauben,
hg
Magenschläuche,
o
Hauptmagenschlauch,
t
Tentakel. Sämtliche Organe sind einzelne Individuen. Nach H
AECKEL
.
Es wird zweckmäßig sein, eine Umschau in der organischen Welt danach zu halten, welche verschiedenen Grade der Individualität wir finden. Der Staat, die Kolonie ist offenbar der höchste Individualitätsgrad, denn auch eine Summe von Staaten überschreitet die Individualitätsstufe des Staates nicht als eine neue Einheit. Die nächst niedere Individualitätsstufe im Staat aber ist die einzelne Person. Sehen wir, ob auch die Person noch niedrigere Individualitätsstufen umfaßt. Schon die Korallenkolonie könnte man in gewissem Sinne als Person auffassen, die aus einzelnen Organen besteht; noch deutlicher aber wird das Verhältnis bei einer anderen Cölenteratengruppe, bei den Siphonophoren. Die Siphonophoren stellen Personen vor, die aus einer Anzahl verschiedenartig entwickelter Organe zusammengesetzt sind. Alle diese Organe, von denen die einen für die Bewegung, die anderen für die Ernährung, einige für die Fortpflanzung, andere für den Schutz des ganzen Körpers entwickelt sind, gruppieren sich um eine Längsachse in regelmäßiger Anordnung herum (Fig. 4). Aber alle diese Organe sind einzelne Individuen, denn die Entwicklungsgeschichte der Siphonophoren zeigt uns einerseits, daß sie durch Knospung sämtlich aus morphologisch homologen Teilen hervorgehen, und andererseits, daß sich in bestimmten Fällen einzelne Individuen, wie z. B. die Schwimmglocken, vom Stamme loslösen und ein selbständiges Dasein als Medusen führen können. Wir sehen also, daß wir die Person der Siphonophoren als eine Kolonie von einzelnen Organen auffassen können, daß somit die Individualitätsstufe der Person die niedrigere Individualitätsstufe der Organe umfaßt. Suchen wir, ob es noch niedrigere Individualitätsstufen gibt als das Organ. Bei genauer Zergliederung eines Organs, etwa eines menschlichen Armes, zeigt sich, daß auch dieses noch aus verschiedenartigen Bestandteilen zusammengesetzt ist, die wir als Gewebe bezeichnen. Der Arm enthält Muskelgewebe, Nervengewebe, Knochengewebe etc.; das Charakteristikum für das Organ ist daher seine Zusammensetzung aus mehreren verschiedenen Gewebearten. Die nächst niedrigere Individualitätsstufe wäre also das Gewebe. In der Tat gibt es Organismen, die nur aus einer einzigen Gewebeform bestehen, bei denen noch keine Verschiedenheit der einzelnen Gewebebestandteile vorhanden ist. Solche freilebenden Gewebe finden wir zahlreich vertreten in der Gruppe der Algen. Eudorina elegans z. B. ist eine durchsichtige, kleine Gallertkugel, in der nebeneinander viele einzelne runde Klümpchen eingebettet liegen, die sich bei näherer Untersuchung als voneinander getrennte Teilchen lebendiger Substanz erweisen. Diese kleinsten Teilchen für sich existierender lebendiger Substanz sind Zellen. In unserem Falle hat jede Zelle zwei zierliche Geißelfäden, durch deren Bewegung die ganze maulbeerförmige Gallertkugel im Wasser umhergetrieben wird (Fig. 5). Jede solche Geißelzelle ist ein selbständiges Individuum und lebt, wenn sie von der Gallertkugel getrennt wird, wie das z. B. auch spontan bei der Fortpflanzung eintritt, ungestört weiter. Hier sehen wir also, daß die Individualitätsstufe des Gewebes die einzelne Zelle in sich birgt. Das Gewebe ist eine Kolonie von Zellen. Aber bei der Zelle sind wir auch an der niedrigsten Individualitätsstufe angelangt. Zwar finden wir, daß auch die Zelle noch zusammengesetzt ist aus verschiedenen Bestandteilen, vor allem aus einer weicheren Grundmasse, dem Protoplasma, und einem darin eingebetteten meist etwas festeren Kern, dem Zellkern; aber wir können bei keiner Zelle diese beiden Bestandteile trennen, ohne daß sie einzeln zugrunde gingen. Eine große Anzahl von Experimenten hat gezeigt, daß kein Protoplasma ohne Zellkern und kein Zellkern ohne Protoplasma allein selbsterhaltungsfähig ist. Also bildet nach unserer Definition des Individuums keins von beiden mehr ein Individuum. Dem entsprechend ist auch in der ganzen Natur nirgends ein freilebender Organismus bekannt, der eine niedrigere Individualitätsstufe repräsentierte als die Zelle. Die Zelle ist der einfachste Individualitätsgrad, die Zelle ist, wie BRÜCKE[22] sagt, der „Elementarorganismus“.
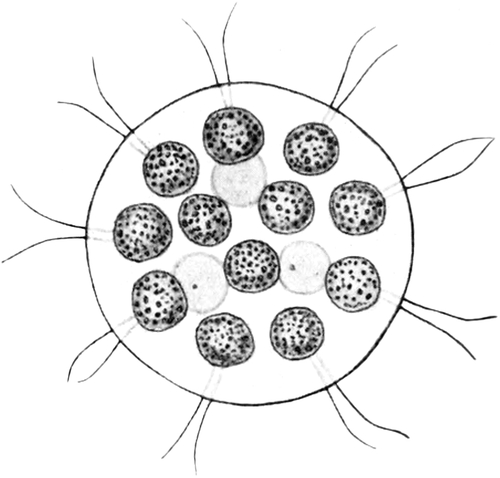
Fig. 5.
Eudorina elegans
. Eine Flagellaten-Kolonie. Die einzelnen Zellindividuen liegen in einer gemeinsamen Gallertkugel eingebettet.
Scheinbar im Widerspruch mit dieser Auffassung der Zelle als eines Individuums niedrigster Ordnung steht die Tatsache, daß die Zelle, wie durch viele Versuche in neuerer Zeit festgestellt worden ist, unter bestimmten Bedingungen doch noch künstlich geteilt werden kann in Teilstücke, die dauernd ungestört weiter leben und sich sogar noch fortpflanzen können. Zerschneidet man z. B. unter dem Mikroskop eine freilebende Infusorienzelle, etwa den zierlichen, im Süßwasser lebenden Stentor Roeselii (Fig. 6 A), der sich besonders dazu eignet, in der Weise, daß jede Hälfte ein Stück des langen stabförmigen Zellkerns mitbekommt, so zeigt sich dieselbe Tatsache wie bei Hydra: Die beiden Teilstücke formen sich wieder zu vollständigen kleinen Stentoren um (Fig. 6 B und C) und leben als solche in vollkommen normaler Weise weiter. Hier ist also die Zelle, das Individuum niedrigster Ordnung, doch noch in zwei Individuen zerlegt worden und kann sogar in noch mehr Individuen geteilt werden, wenn man die Operationen so einrichtet, daß jedes Stück sowohl etwas Protoplasma als auch einen Teil des Zellkerns mitbekommt. Wir werden dieser Tatsache von fundamentaler Bedeutung noch öfter zu gedenken haben. Aber im vorliegenden Falle steht sie doch nur scheinbar im Widerspruch mit der Auffassung der Zelle als Elementar-Individuum, denn, was wir durch die Teilung erhalten haben, sind ja in Wirklichkeit gar keine neuen Individualitätsstufen, sondern vollkommene Stentoren, d. h. Individuen vom Formenwert einer Zelle. Bei allen diesen Teilungen von Zellen, wo wir in den Teilstücken Protoplasma und Kern haben, sind immer die Teilstücke ebenfalls wieder Zellen; über die Zelle kommen wir dabei nicht hinaus. Teilen wir dagegen so, daß das eine Teilstück Protoplasma und Kern, das andere nur Protoplasma ohne Kern bekommt, so bleibt das erstere leben und repräsentiert eine vollständige Zelle, das letztere aber, das nicht mehr auf der Individualitätsstufe der Zelle steht, geht unfehlbar zugrunde. Die Zelle bleibt also in jedem Falle der Elementarorganismus.
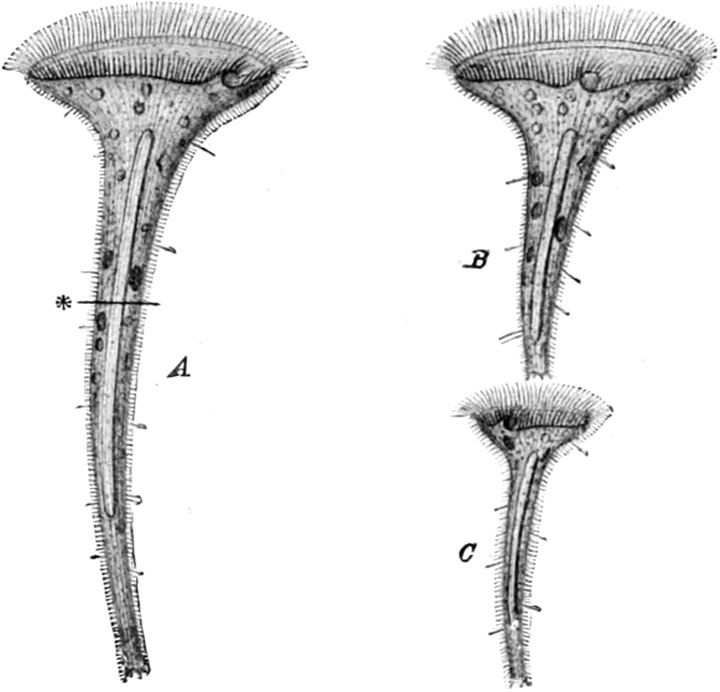
Fig. 6.
Stentor Roeselii
, eine trompetenförmige Infusorienzelle.
A
quer zerschnitten,
B
und
C
die beiden Teilstücke haben sich zu vollständigen Stentoren regeneriert. Die helle, langgestreckte Masse im Innern bezeichnet den Kern.
Fassen wir unsere bisherigen Betrachtungen über die Individualität zusammen, so können wir in der Organismenwelt fünf Individualitätsstufen unterscheiden und in folgender Weise charakterisieren:
Individuen erster Ordnung sind die Zellen. Sie repräsentieren die Elementarorganismen, die nicht mehr aus niedrigeren, für sich lebensfähigen Einheiten zusammengesetzt sind. Ein Beispiel ist das einzellige Wimper-Infusorium Stentor (Fig. 6).
Individuen zweiter Ordnung sind die Gewebe. Die Gewebe sind Verbände von Individuen erster Ordnung, deren jedes gleich dem anderen ist. Ein Beispiel ist die flagellate Algenkugel Eudorina (Fig. 5).
Individuen dritter Ordnung sind die Organe. Die Organe sind Verbände von verschiedenen Arten Individuen zweiter Ordnung. Ein Beispiel ist die Hydra (Fig. 2), deren ganzer Körper nur aus zwei Schichten von Geweben besteht.
Individuen vierter Ordnung sind die Personen. Die Personen sind Verbände von verschiedenen Individuen dritter Ordnung. Ein Beispiel ist der Mensch, dessen Körper aus der Vereinigung verschiedener Organe besteht.
Individuen fünfter Ordnung sind die Staaten. Die Staaten sind Verbände von Individuen vierter Ordnung. Beispiele sind die Ameisen- und Bienenstaaten.
Dieses Schema erfordert aber noch eine Bemerkung. Es zeigt zunächst, daß jedes Individuum höherer Ordnung aus einem Verband von Individuen der nächst niedrigeren Ordnung besteht. Nun sind aber die Konstituenten eines Individuums höherer Ordnung nicht immer reelle Individuen, d. h. sie sind, wenn sie aus ihrem Verbande getrennt werden, nicht immer für sich selbsterhaltungsfähig. Sie haben nur die Fähigkeit der Selbsterhaltung, solange sie im Verbande leben, sind also nur virtuelle Individuen. Nehmen wir z. B. ein Individuum vierter Ordnung, also eine Person, etwa einen Menschen, so besteht diese Person aus einzelnen Organen, also aus Teilen, die ihrem Formenwert nach Individuen dritter Ordnung gleichen. Diese Organe sind aber nur virtuelle, nicht reelle Individuen, denn aus dem Verband getrennt gehen sie zugrunde. Dasselbe kann bei Individuen aller Ordnungen der Fall sein. Auch z. B. die Zelle eines tierischen Gewebes, aus dem Verband mit ihren Schwestern getrennt, ist für sich nicht lebensfähig; sie ist also nur als virtuelles Individuum im Gewebe enthalten usf. In anderen Fällen dagegen können die Konstituenten eines Individuums höherer Ordnung auch zu reellen Individuen der nächst niederen Ordnung werden, wenn man sie aus dem Verbande trennt, wie das z. B. der Fall der Eudorina zeigt, bei der die einzelnen Zellen auch getrennt für sich lebensfähig sind.
Was aus diesen Betrachtungen hervorgeht, ist die wichtige Tatsache, daß alle lebendigen Individuen, welcher Ordnung sie auch angehören mögen, in letzter Instanz entweder aus Zellen als elementaren Bausteinen zusammengesetzt oder selber freilebende Zellen sind. Die Zelle muß daher der Herd derjenigen Vorgänge sein, deren Ausdruck die Lebensäußerungen sind, d. h. der Sitz der Lebensvorgänge selbst.
Demgegenüber ist vor einiger Zeit von ALTMANN[23] der Versuch gemacht worden, eine noch niedrigere Individualitätsstufe nachzuweisen als die Zelle, und damit die Anschauung zu widerlegen, daß die Zellen die Elementarorganismen seien. Seit langer Zeit bereits weiß man, daß im Inhalt der Zellen weit verbreitet sich in einer homogen aussehenden Grundsubstanz rundliche Körnchen von verschiedener Größe finden, die als Elementarkörnchen, Granula oder Mikrosomen bezeichnet werden (Fig. 7). In manchen Fällen sind nur wenige solcher Granula in der Zelle vorhanden; in anderen Fällen ist die ganze Zelle dicht mit ihnen vollgepfropft, so daß die Grundsubstanz dazwischen fast verschwindet. Diese Granula betrachtet ALTMANN als die eigentlichen Elementarorganismen und bezeichnet sie als „Bioblasten“. Sie sollen nach ALTMANN die eigentlich lebendigen Elemente in der Zelle vorstellen, die den Sitz der Lebensvorgänge bilden. Die Zelle selbst ist nach der Auffassung ALTMANNs dann als eine Kolonie von Bioblasten anzusehen, also nicht mehr als Elementarorganismus, sondern als Individuum höherer Ordnung. Freilich kann man den einzelnen Bioblasten, wenn er aus dem Verband mit den übrigen Bioblasten der Zelle getrennt ist, nicht mehr am Leben erhalten. Indessen gibt es nach ALTMANN auch freilebende Bioblasten in der Natur, und das sind die Bakterien. Das große Heer der Spaltpilze oder Bakterien stellt, wie ALTMANN meint, nichts weiter vor als freilebende Elementarorganismen, die den Granulis oder Bioblasten, welche den Zelleninhalt zusammensetzen helfen, in bezug auf ihre Individualitätsstufe durchaus gleichwertig sind.
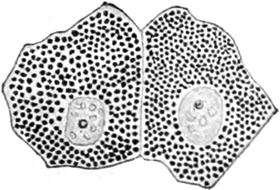
Fig. 7.
Leberzellen mit Granulis
. Nach A
LTMANN
.
Vergeblich sieht man sich in den Arbeiten ALTMANNs nach einer stichhaltigen Begründung der Hypothese um, nach der die Bioblasten die Elementarorganismen vorstellen. Dagegen ist es nicht schwer, die Unhaltbarkeit dieser Auffassung zu erkennen, so daß sie denn heute auch von der wissenschaftlichen Forschung vollkommen abgelehnt worden ist, und der Versuch ALTMANNs, in den sogenannten Bioblasten eine noch niedrigere Individualitätsstufe nachzuweisen als die Zelle, für völlig mißlungen angesehen werden muß.
Als die beiden wichtigsten Momente, welche die Granulahypothese unhaltbar erscheinen lassen, sind folgende zu betrachten. Einerseits faßt ALTMANN unter dem Begriff des Granulums die allerverschiedensten Elemente des Zellinhalts zusammen, Elemente, die schlechterdings überhaupt nicht miteinander homologisiert werden können. Zwar hat ALTMANN später die Auffassung, daß die Chlorophyllkörper, die den Pflanzenzellen die grüne Farbe verleihen, ebenfalls Bioblasten seien, fallen gelassen, aber immerhin umfaßt der Begriff noch jetzt die heterogensten Dinge. So wurden von ALTMANN als Granula nicht nur die feinen grauen Körnchen betrachtet, die weit verbreitet in den verschiedensten freilebenden und Gewebezellen vorkommen und selbst wieder die allerverschiedenste chemische Zusammensetzung und Bedeutung für das Zellleben haben, sondern auch die feinen Farbstoffkörnchen der Pigmentzellen, die den Geweben, in denen sie liegen, ihre charakteristische Farbe verleihen, ferner die feinen, plättchenartigen Gebilde, die aus dem Dotter der Eier bekannt sind, und schließlich sogar die kleinen Oeltröpfchen und Fettkügelchen, die sich in den verschiedenen Gewebezellen, besonders in der Leber und den Zellen des Unterhautbindegewebes vorfinden. Unter den Granulis im ALTMANNschen Sinne werden aufgenommene Nahrungsstoffe und Stoffwechselprodukte der Zelle einträchtig zusammengefaßt und als Elementarorganismen betrachtet, also Stoffe, welche die allerverschiedenste Rolle im Zellleben spielen oder gespielt haben. Andererseits aber weist ALTMANN für keine einzige aller dieser Granulaformen nach, daß sie die allgemeinen Lebensäußerungen zeigt, eine Forderung, die man doch erfüllt sehen muß, um die Bezeichnung „Elementarorganismus“ zulässig finden zu können. Uebrigens dürfte wohl niemand einen Versuch, diesen Nachweis zu führen, für aussichtsvoll halten, besonders wenn es sich um einen in der Zelle liegenden Oeltropfen oder ein Pigmentkorn handelt. Nun glaubt zwar ALTMANN, in den Bakterien freilebende Granula erblicken zu müssen, aber hierfür fehlt nicht nur jeder Anhaltspunkt, sondern wir wissen auch heute, daß die Bakterien vollkommene Zellen sind, also Organismen, die ALTMANN als Kolonien von Bioblasten betrachtet.
Diese Bedenken genügen schon, um die Auffassung der Granula als Elementarorganismen umzustoßen. Es erscheint überhaupt durchaus unzulässig, Gebilde als Elementarorganismen zu bezeichnen, für die wir keine analogen freilebenden Organismen kennen. Wenn wir das tun, dann fällt der Begriff des organischen Individuums vollständig in sich zusammen, denn wir haben dann keine Berechtigung, bei irgendeinem Teil der lebendigen Substanz halt zu machen, sondern können mit der gleichen Berechtigung schließlich ein Sauerstoff- oder Kohlenstoff- oder sonst irgendein Atom, das gerade am Lebensvorgang beteiligt ist, als Elementarorganismus bezeichnen. Dann gäbe es ebensoviel verschiedene Arten von Elementarorganismen wie organische Elemente. Eine andere Frage ist die, was wir als einen Organismus, als ein organisches Individuum bezeichnen wollen, eine andere diejenige, was wir überhaupt lebendig nennen wollen. Ueber die letztere Frage werden wir uns später auseinander zu setzen haben; bezüglich der ersteren aber müssen wir, wenn uns der Begriff des organischen Individuums nicht zwischen den Fingern zerfließen soll, unbedingt an der Forderung festhalten, daß zum Organismus die Summe aller der Lebensäußerungen gehört, welche die Selbsterhaltung repräsentieren, und dieser Bedingung entspricht als niedrigster Organismus nur die Zelle. Die Zelle bleibt daher das Individuum niedrigster Ordnung — die Zelle ist der Elementarorganismus.
2. Allgemeine und spezielle Zellbestandteile.
Der Gedanke, daß die Summe der Vorgänge, welche das Leben in seiner bunten Mannigfaltigkeit bilden, in allen ihren wesentlichen Elementen schon an das mikroskopisch winzige Klümpchen lebendiger Substanz gebunden ist, das die einzelne Zelle vorstellt, regt so unwiderstehlich den Drang zum tieferen Nachforschen in der Zelle an, daß seit jener Zeit, als man die Zellen zuerst in ihrer Bedeutung als Elementarorganismen erkannte, bis jetzt sich ein unzählbares Heer von Forschern mit dem eingehenderen Studium der Zelle und ihrer Bestandteile beschäftigt hat, ein Umstand, dem wir es verdanken, daß unsere morphologische Kenntnis der Zelle von Jahr zu Jahr erweitert und der Begriff der Zelle immer mehr und mehr präzisiert worden ist.
Der Begriff dessen, was man zum Wesen der Zelle zu rechnen habe, ist nicht immer derselbe gewesen. Die Entstehung des Zellbegriffs stammt, wie wir sahen[24], aus der mikroskopischen Beobachtung der Pflanzen. Die Mikroskopiker des 17. und 18. Jahrhunderts fanden, daß die Pflanzengewebe neben langen röhrenförmigen Gebilden auch kleine, kammerartig durch Wände voneinander abgegrenzte Elemente enthielten, die eine Flüssigkeit beherbergten. Diese kleinen Gebilde bekamen wegen ihrer Aehnlichkeit mit den großen Zellen der Bienenwaben den Namen „Zellen“. So stellte man sich zu jener Zeit die Zelle als ein einfaches, von einer Wand oder Membran umschlossenes Flüssigkeitströpfchen vor. Als das Charakteristische, das auch zu der für die Pflanzenzellen sehr bezeichnenden Namengebung „Zelle“ geführt hatte, galt dabei die „Zellmembran“, die eben die Kammer- oder Zellenform bedingte. Diese Auffassung erhielt sich auch noch, als bereits SCHLEIDEN neben der Zellflüssigkeit oder dem Zellsaft noch eine schleimige, dickflüssige Masse, den „Pflanzenschleim“, oder, wie MOHL sie nannte: das „Protoplasma“ entdeckte, und als von seiten SCHWANNs der Zellbegriff auch auf die Elementarteile der tierischen Gewebe ausgedehnt wurde.
Erst die grundlegenden Arbeiten von MAX SCHULTZE[25] gaben dem Zellbegriff einen ganz anderen Inhalt. Das Studium der Rhizopoden, jener einzelligen Organismen, deren nackter Protoplasmakörper an beliebiger Stelle seine zähflüssige Leibessubstanz zu feinen Fäden und Netzen auszuziehen vermag, führte MAX SCHULTZE zu der Ansicht, daß die Zellmembran nicht das Wesentliche der Zelle sein könne, denn die große Menge der Rhizopodenformen hat zeitlebens keine Zellmembran, sondern daß das Wesentliche die Substanz sei, die schon früher von DUJARDIN[26] bei den nackten Rhizopoden und Infusorien des Süßwassers als Sarkode bezeichnet worden war. Durch eine Vergleichung der Rhizopoden und der Pflanzenzellen lieferte darauf MAX SCHULTZE den Beweis, daß die Substanz der Rhizopoden, die Sarkode, durchaus identisch ist mit dem zähflüssigen Inhalt der Pflanzenzellen, dem Protoplasma, und so begründete er die „Protoplasmatheorie“, nach welcher der wesentliche Bestandteil der Zelle das Protoplasma ist. Die Auffassung, daß die Zelle ein Klümpchen Protoplasma sei, hat sich in der Folge auch glänzend bewährt gegenüber der alten Auffassung, welche die Zellmembran für das Wesentliche ansah, denn nicht nur ist mit der ungeheuren Formenfülle der einzelligen Rhizopoden, zu denen die kalkschaligen Polythalamien oder Foraminiferen und die kieselschaligen Radiolarien ebenso gehören wie die völlig schalenlosen Amöben, eine erdrückende Menge von membranlosen Zellen bekannt geworden, sondern man hat auch gesehen, daß bei der Entwicklung vieler Pflanzen und Tiere als Eier einzellige Stadien vorkommen, die jeder Zellmembran entbehren. So ist seit MAX SCHULTZEs Begründung der Protoplasmatheorie die Auffassung, daß die Zellmembran ein allgemeiner Zellbestandteil sei, vollständig fallen gelassen worden.
Indessen mit der Definition MAX SCHULTZEs sind die wesentlichen oder allgemeinen Zellbestandteile noch nicht erschöpft. Schon BROWN[27] hatte 1833 im Protoplasma noch ein besonderes Gebilde, den Zellkern, entdeckt, der als ein rundliches Körnchen durch sein abweichendes Lichtbrechungsvermögen deutlich von dem ihn einschließenden Protoplasma zu unterscheiden war. SCHLEIDEN[28], der diese Entdeckung BROWNs aufgriff, wies den Zellkern als einen weit verbreiteten Bestandteil der Zelle im Protoplasma vieler Pflanzen nach, ließ sich aber verleiten, in seiner Theorie der Phytogenesis den Kern als dasjenige Element zu betrachten, aus dem die Zelle erst im Lauf der individuellen Entwicklung der Pflanze entstände. Seit jener Zeit hat man dem Zellkern immer mehr Aufmerksamkeit geschenkt. Man fand ihn nicht nur in den pflanzlichen Zellen, sondern nach SCHWANNs[29] Arbeiten auch in den verschiedensten tierischen Zellen. Besonders aber, als man mittels gewisser Farbstoffe, wie Karmin, Hämatoxylin etc., den Kern färben und so im Protoplasma, in dem er eingebettet ist, deutlich sichtbar zu machen lernte, kam man mehr und mehr zu der Ansicht, daß der Kern einen sehr charakteristischen Bestandteil der Zelle vorstellt, und bald entstand die Frage, ob es überhaupt Zellen ohne Kern gäbe, ob nicht der Kern ein allgemeiner Bestandteil der Zelle sei, der ebenso wie das Protoplasma zum Wesen der Zelle gehöre.
Unter den einzelligen, freilebenden Rhizopoden, auf die MAX SCHULTZEs Untersuchungen die Aufmerksamkeit gelenkt hatten, fand HAECKEL[30] eine ganze Anzahl, in denen keine Spur von einem Kern nachzuweisen war, die HAECKEL, da sie aus einem einfachen Klümpchen Protoplasma zu bestehen und somit die niedrigsten und einfachsten überhaupt denkbaren Organismen zu sein schienen, als Moneren bezeichnete. Eine andere Gruppe von Organismen, in denen sich keine Kerne nachweisen ließen, war die ebenfalls erst in neuerer Zeit in den Vordergrund des Interesses gezogene Mikroorganismengruppe der Sproßpilze und der Spaltpilze (Bakterien), der kleinsten überhaupt existierenden lebendigen Wesen, die, wenn sie auch bereits eine feste, unveränderliche Form besitzen, doch keine Spur von einer Differenzierung ihres durch und durch gleichartig erscheinenden Protoplasmakörpers erkennen ließen. Wenn wir von den roten Blutkörperchen der Warmblüter absehen, die ebenfalls keine Differenzierung ihrer Körpersubstanz in zwei gesonderte Teile, in Protoplasma und Kern, zeigen, die sich aber nachweislich aus wirklichen, kernhaltigen Zellen entwickeln, so enthielten die Gruppen der Moneren, der Sproßpilze und der Bakterien die einzigen anscheinend kernlosen Zellen.
Indessen die Auffassung der Moneren als kernloser Zellen änderte sich mit der in neuerer Zeit so enorm aufblühenden mikroskopischen Färbetechnik mehr und mehr. Immer mehr von den Organismen, die HAECKEL noch als Moneren beschrieben hatte, wurden bei Anwendung der neueren, komplizierten Färbemethoden als kernhaltige Zellen erkannt; in manchen von ihnen wurde sogar eine große Zahl kleiner Kerne nachgewiesen, und GRUBER[31] fand Formen, in denen die Kernsubstanz in unzähligen, äußerst winzigen Körnchen durch das ganze Protoplasma zerstreut ist (Fig. 8). So schmolz die Zahl der ursprünglichen Moneren immer mehr zusammen, und die wenigen, deren man noch nicht zu erneuter Untersuchung habhaft werden konnte, werden von den meisten Forschern jetzt ebenfalls für kernhaltige Zellen gehalten, in denen nur die unvollkommenere Technik der früheren Zeit, wie bei den anderen, jetzt für kernhaltig erkannten Zellen, die Kerne nicht nachzuweisen vermochte.
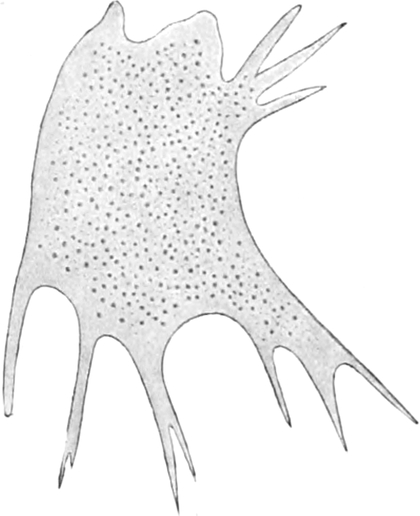
Fig. 8.
Pelomyxa pallida
. Ein Rhizopod mit sehr fein verteilter Kernsubstanz. Nach G
RUBER
.
Viel länger als die Moneren haben die Bakterien den Bemühungen getrotzt, eine Differenzierung, die dem Kern und dem Protoplasma der übrigen Zellen entspräche, in ihnen aufzufinden. Alle erdenklichen Färbemethoden und die stärksten mikroskopischen Vergrößerungen vermochten nicht zwei voneinander geschiedene Formen der lebendigen Substanz in ihrem winzigen, durchaus homogen erscheinenden Körper nachzuweisen. Dieser Stand unserer Kenntnisse dauerte trotz des gewaltigen Aufschwungs, den die Bakteriologie in neuerer Zeit nahm, bis in das letzte Jahrzehnt des vorigen Jahrhunderts. Erst 1890 gelang es BÜTSCHLI[32], in dem Körper der Bakterien eine feinere Struktur zu entdecken. Er fand nämlich, daß sich bei sehr starken Vergrößerungen und unter Anwendung bestimmter, nicht zu starker Intensität der Durchleuchtung mit den spezifischen Kernfärbemitteln, die, wie z. B. Hämatoxylin, nur die Kernsubstanz und nicht das Protoplasma färben, zwei verschiedene Substanzen im Bakterienkörper sichtbar machen lassen, von denen die eine sich intensiv färbt, während die andere den Farbstoff nicht annimmt. Das Massenverhältnis der beiden Substanzen ist charakteristisch. Es überwiegt nämlich meist die Masse der färbbaren Substanz über die Masse der ungefärbten. Dagegen ist die gegenseitige Lagerung beider bei verschiedenen Bakterienformen verschieden. Während bei der einen, wie z. B. Bacterium lineola (Fig. 9 a), die gefärbte Substanz in der Mitte liegt und die ungefärbte eine schmale peripherische Schicht um dieselbe bildet, ist bei anderen, besonders den korkzieherartig gewundenen Spirillenformen, wie dem im Sumpfwasser gemeinen Spirillum undula (Fig. 9 b), die ungefärbte Substanz ganz an einem oder an beiden Enden des langgestreckten, nur aus gefärbter Substanz bestehenden Körpers angesammelt. Diese Differenzierung der Körpersubstanz in zwei verschiedene Teile, von denen der eine sich mit den spezifischen Kernfärbemitteln färbt, während der andere ungefärbt bleibt, scheint vollständig der Sonderung der lebendigen Substanz in Kern und Protoplasma, wie sie alle anderen Zellen charakterisiert, zu entsprechen, und auch im Tierreich haben wir Zellenformen, die ganz dasselbe Massenverhältnis von beiden Substanzen zueinander zeigen, nämlich die Samenfäden oder Spermatozoen, deren einzelliger Körper ebenfalls aus einer großen Menge Kernsubstanz und einer nur sehr geringen Menge von Protoplasma besteht. Es darf indessen nicht unerwähnt bleiben, daß von anderer Seite[33] gegen die BÜTSCHLIsche Auffassung des Bakterienkörpers der Einwand geltend gemacht worden ist, es handle sich hier um Differenzierungen, die nur durch die angewandten Reagentien hervorgebracht worden seien, um Veränderungen, wie sie in der Botanik als „Plasmolyse“ bezeichnet werden. Es läßt sich vorläufig nicht entscheiden, wie weit dieser Einwand zutrifft. Jedenfalls ist er nicht allgemein als zutreffend anerkannt worden, und BÜTSCHLI[34] hat diese Deutung durch schwerwiegende Argumente zurückzuweisen gesucht. Außerdem weiß man, daß auch im Körper der Bakterien die sonst für die Zellkerne charakteristischen Substanzen, die Nukleine, nicht fehlen.
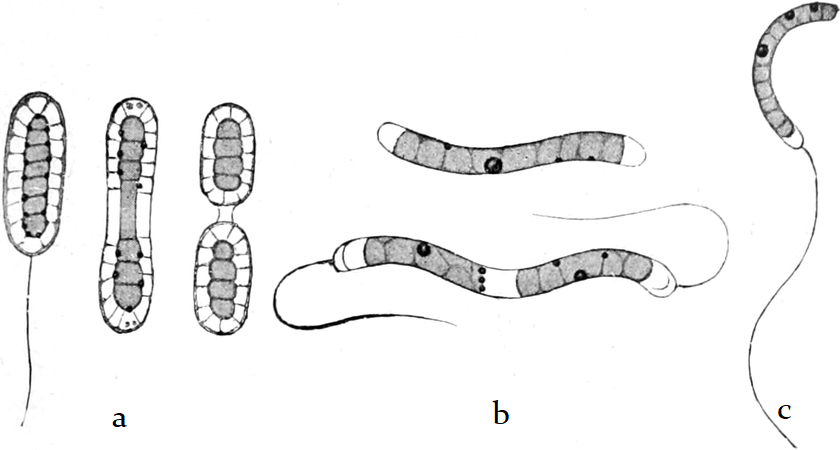
Fig. 9.
Struktur verschiedener Bakterien
. Nach B
ÜTSCHLI
.
a
Bacterium lineola
, normal und in Teilung begriffen,
b
Spirillum undula
,
c
Bacterium
aus Sumpfwasser.
Bei den Sproßpilzen, den verschiedenen Hefezellarten endlich, war es ebenfalls bis in die neuere Zeit nicht möglich gewesen, mit Sicherheit einen Zellkern zu finden. Erst gegen Ende des vorigen Jahrhunderts gelang es einigen Untersuchern, besonders dem englischen Forscher HAROLD WAGER[35], mit aller nur wünschbaren Deutlichkeit den Zellkern nachzuweisen. Der Kernapparat der Hefezellen steht sogar auf einer ziemlich hohen Entwicklungsstufe. Er besteht aus einer Vakuole, die chromatische Elemente enthält, und einem isoliert davon und neben ihr im Protoplasma liegenden Nukleolarkörper. Bei der Sprossung zeigt dieser Kernapparat ein sehr charakteristisches Verhalten, das am besten durch die beistehende Fig. 10 veranschaulicht wird.
So scheint es nach dem jetzigen Stande unserer Kenntnisse, als ob es unter den heute auf der Erde lebenden Organismen überhaupt keine Zellen gäbe, in denen nicht eine Sonderung von zwei verschiedenen Substanzen vorhanden wäre, als ob also außer dem Protoplasma auch jede Zelle einen Kern besäße. Eine andere Frage ist es freilich, ob es während der Entwicklungsgeschichte der lebendigen Substanz auf der Erde in früheren Zeiten einmal Organismen gegeben habe, bei denen der ganze Körper aus einer einzigen homogenen Substanz bestand, bei denen noch keine Sonderung in verschiedene Stoffe eingetreten war. Sollte es jemals solche Organismen gegeben haben, so könnten wir diese als Cytoden, wie HAECKEL die kernlosen Elementarorganismen bezeichnet, den wirklichen Zellen gegenüberstellen. Jedenfalls aber können wir vorläufig daran festhalten, daß zu dem Begriff der Zelle nicht bloß eine einzige homogene Masse, das Protoplasma, sondern auch noch eine davon differente Substanz, die Kernsubstanz, gehört. Demnach wäre die morphologische Definition MAX SCHULTZEs in folgender Weise zu erweitern: Die Zelle ist ein Klümpchen Protoplasma mit einer gewissen Menge darin eingebetteter Kernsubstanz.
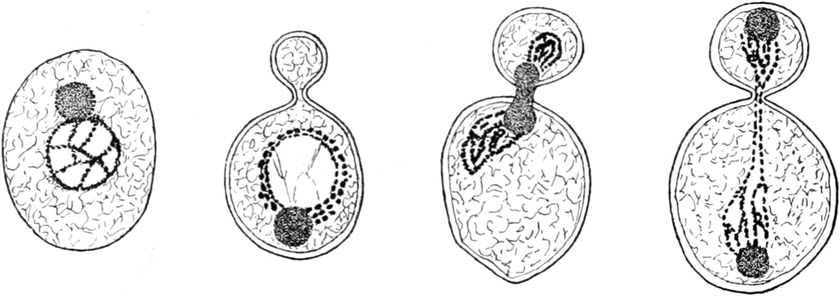
Fig. 10.
Hefezellen
(Saccharomyces cerevisiae) mit ihrem Kernapparat in vier verschiedenen Stadien der Sproßbildung. Der helle Hof ist die Kernvakuole mit den dunklen Chromatinkörnchen, der dunkle Kreis das Kernkörperchen. Nach H
AROLD
W
AGER
.
Ist hiermit aber die Definition der Zelle erschöpft, oder gehören zum morphologischen Begriff der Zelle noch mehr Bestandteile? Wenn wir mit stärkeren Vergrößerungen das Protoplasma der Zellen durchmustern, finden wir, daß außer dem Kern in vielen Zellen noch andere distinkte Bestandteile in der protoplasmatischen Grundmasse eingebettet liegen. So finden wir in manchen Zellen Oeltröpfchen, in anderen Pigmentkörnchen, in Pflanzenzellen Stärkekörner etc., aber keinen von allen diesen Körpern treffen wir in jeder Art von Zellen; sie sind sämtlich nur spezielle, keine allgemeinen Zellenbestandteile. Dagegen schien es in neuerer Zeit den Anschein zu gewinnen, als ob neben den beiden bisher allein als allgemein bekannten Zellbestandteilen, dem Protoplasma und dem Zellkern, doch noch ein dritter allgemeiner Zellbestandteil existierte, das Polkörperchen, Zentralkörperchen oder Zentrosom.
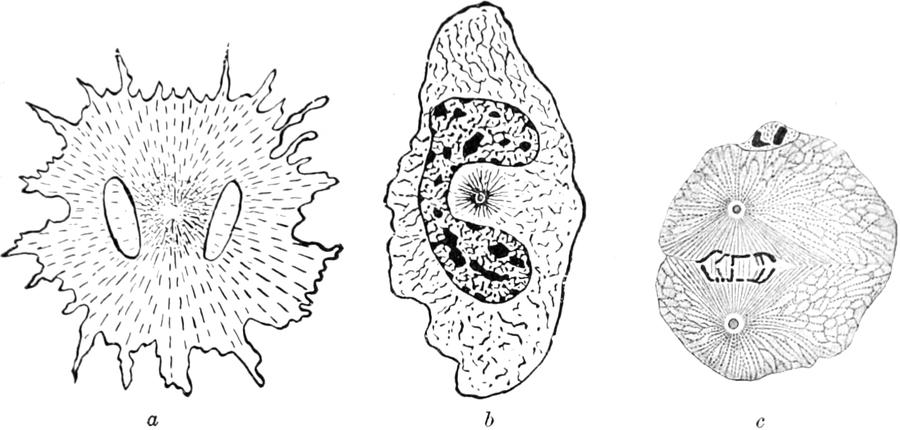
Fig. 11.
a
Pigmentzelle vom Hecht
. Zwischen den beiden Kernen liegt das Zentrosom mit seiner Protoplasmastrahlung. Nach S
OLGER
.
b
Leukocyt von einer Salamanderlarve
. Neben dem hantelförmigen Kern liegt rechts das Zentrosom mit Strahlenkranz. Nach F
LEMMING
.
c
Eizelle
, in Teilung begriffen. Um die beiden Zentrosomen deutliche Protoplasmastrahlung. Nach B
OVERI
.
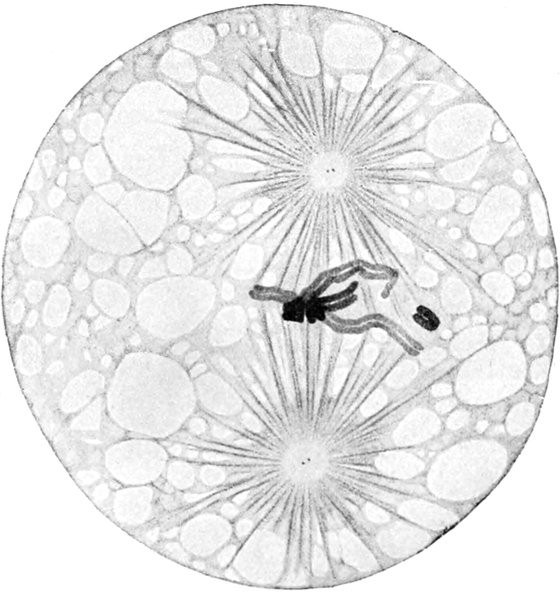
Fig. 12.
Ei des Spulwurms mit zwei Zentrosomen
, deren jedes zwei Zentriole enthält. Nach B
OVERI
.
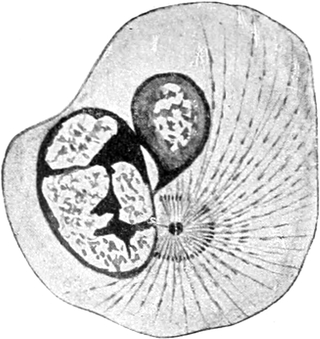
Fig. 13.
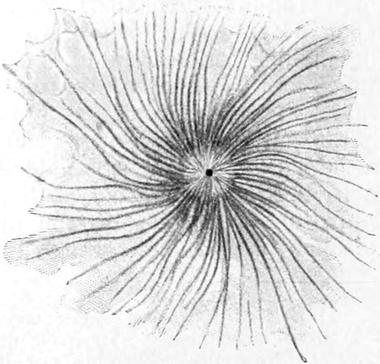
Fig. 14.
Fig. 13. Leukocyt vom Salamander mit Zentrosom und Strahlenfigur. Im Zentrosom das in zwei Hälften geteilte Zentriol. Nach HEIDENHAIN.
Fig. 14. Zentrosom mit Protoplasmastrahlung aus dem Ei der Lungenschnecke Physa fontinalis. Nach KOSTANECKI.
Das Zentrosom (Fig. 11) ist erst in neuerer Zeit etwas genauer bekannt geworden. Zwar war es schon vor drei Jahrzehnten, als man die eigentümlichen Kernteilungsvorgänge bei der Zellvermehrung untersuchte, bemerkt worden, aber erst später wurde es von VAN BENEDEN[36] und BOVERI[37] als wichtiges Element in der Zelle erkannt, das sich wie der Zellkern bei der Vermehrung der Zellen durch Teilung fortpflanzt. VAN BENEDEN kam daher zu der Ansicht, daß das Zentrosom ebenso wie der Zellkern und das Protoplasma ein allgemeiner Zellbestandteil sei, eine Annahme, die durch die Beobachtungen von FLEMMING, SOLGER, HEIDENHAIN u. a. gestützt zu werden schien, die auch in anderen Zellarten, wie Leukocyten, Pigmentzellen, Epithelzellen etc., ein oder mehrere Zentrosomata auffanden, und zwar zu Zeiten, wo die Zellen nicht im Teilungszustande waren. Trotzdem ist es bei einer großen Anzahl von Zellen bisher nicht gelungen, ein Zentrosom nachzuweisen, und in letzter Zeit mehren sich die Stimmen, die auch in einzelnen Fällen, in denen man früher mit Sicherheit die Existenz eines Zentrosoms behauptete, die letztere bestreiten, ja überhaupt die Existenz des Zentrosoms als eines dauernden Zellbestandteils verneinen. Indessen das kann vielleicht in der Natur des Zentrosoms begründet sein. Das Zentrosom ist ein wegen seiner verschwindenden Kleinheit im „Ruhezustande“ der Zelle sehr schwer auffindbarer Bestandteil, der sich mit unseren besten mikroskopischen Hilfsmitteln nur als ein kleines homogenes Kügelchen (Archoplasma) mit einem durch Teilung in zwei Hälften zerfallenden Körnchen (Zentriol) erkennen läßt (Fig. 12, Fig. 13 u. Fig. 14). Dazu kommt, daß das Zentrosom mit den gewöhnlichen Farbstoffen in der Regel nicht färbbar ist. Auch die Versuche M. HEIDENHAINs, spezifische Färbemittel für das Zentrosom zu finden, wie sie für den Kern existieren, haben nicht zu befriedigenden Ergebnissen geführt. Das Zentrosom wird erst deutlich bemerkbar durch die Strahlung des Protoplasmas (Astrosphäre), von der es bei bestimmten Zuständen der Zelle umgeben wird. Bei der Teilung der Zellen nämlich ordnet sich das Protoplasma in Form eines Strahlenkranzes um das Zentrosom herum an, das den Mittelpunkt der Strahlungsfigur bildet (Fig. 11, 12, 13, 14) und eben als Mittelpunkt dieser eigentümlichen Strahlung erst augenfälliger hervortritt.
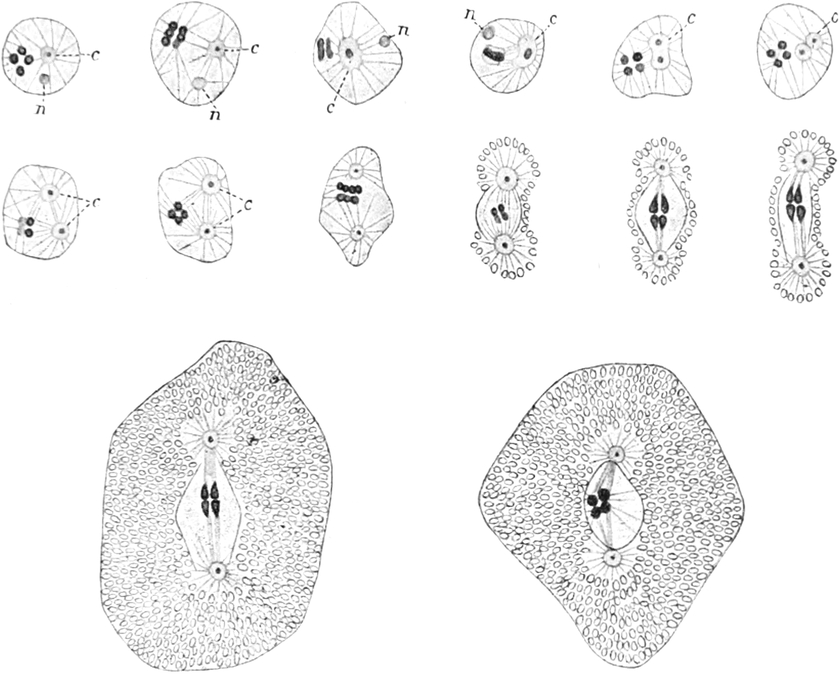
Fig. 15.
Teilung und Austritt des Zentrosoms bei dem Kern der Samenzellen von Ascaris megalocephala
. Oben zwei Reihen aufeinanderfolgender Stadien des Kerns (
n
Nucleolus,
c
Zentrosom). Darunter zwei Samenzellen nach Austritt des Zentrosoms aus dem Kern. Nach B
RAUER
.
Während eine große Zahl von Forschern, vor allem VAN BENEDEN, dazu neigt, das Zentrosom als einen eigenen Bestandteil der Zelle aufzufassen, da es immer im Protoplasma getrennt vom Zellkern vorkommt, vertritt O. HERTWIG[38] die Meinung, daß das Zentrosom als Teil der Kernsubstanz zum Kern gehört und nur während der Tätigkeit des Kerns bei der Befruchtung und Teilung aus dem Kern in das Protoplasma übertritt, um nachher bei dem Ruhezustand der Zelle wieder als Teil der Kernsubstanz in den Kern zurückzutreten. Daß diese Annahme HERTWIGs für gewisse Fälle in der Tat zutrifft, haben wenig später die ausgezeichneten Untersuchungen von BRAUER[39] über die Entwicklung der Samenzellen des Pferdespulwurms (Ascaris megalocephala) gezeigt. BRAUER konnte feststellen, daß das Zentrosom bei diesen Zellen während der Ruhezeit im Kern selbst enthalten ist und sich sogar in gewissen Fällen im Kern selbst teilt, um dann erst in das Protoplasma auszutreten und hier die Protoplasmastrahlung zu erzeugen, welche das Zentrosom bei der Teilung der Zelle zu umgeben pflegt (Fig. 15). Andererseits wissen wir aber jetzt, daß in der großen Mehrzahl von Fällen das Zentrosom dauernd auch während der Ruhe der Zelle außerhalb des Kerns liegen bleibt. HEIDENHAIN[40] und BOVERI[41] meinen daher, daß wir weder Grund haben, das Zentrosom als einen Kernbestandteil, noch als einen Protoplasmabestandteil zu betrachten; sie sind vielmehr geneigt, es vorläufig bis die Erfahrungen eine festere Form angenommen haben, als einen selbständigen Zellbestandteil aufzufassen, der gleichwertig neben Zellkern und Protoplasma in der Zelle existiert. Dieser Auffassung würden aber die neuerdings wohl als gesichert zu betrachtenden Beobachtungen von WILSON[42], WASSILIEFF[43] und anderen im Wege stehen, aus denen hervorgeht, daß auch in kernlosen und zentrosomalosen Protoplasmamassen von Eizellen durch künstliche Einwirkung bestimmter Stoffe Zentrosomen und Strahlungsfiguren, unter Umständen sogar in sehr großer Zahl, zur Entstehung gebracht werden können (Fig. 16). Wenn also das Zentrosom im Eiprotoplasma sich vollständig neu entwickeln kann, und wenn es nicht, wie man früher allgemein glaubte, immer nur aus der Teilung schon vorhandener Zentrosome hervorgeht, dann kann man es auch nicht dem Kern und Protoplasma, die immer nur aus der Teilung von vorhandenen Kern- und Protoplasmamassen entstehen, als gleichwertigen selbständigen Zellbestandteil an die Seite stellen. Auf keinen Fall aber haben wir, da ja sehr viele Zellformen, namentlich unter den einzelligen Organismen, bekannt sind, in denen man bisher noch kein Zentrosom hat auffinden können, die Berechtigung, im Zentrosom einen allgemeinen Zellbestandteil zu erblicken wie im Kern und im Protoplasma. Unter den sämtlichen Lebensäußerungen der Zelle ist übrigens bisher nur bei der Fortpflanzung und Befruchtung eine Beteiligung des Zentrosoms bekannt geworden.
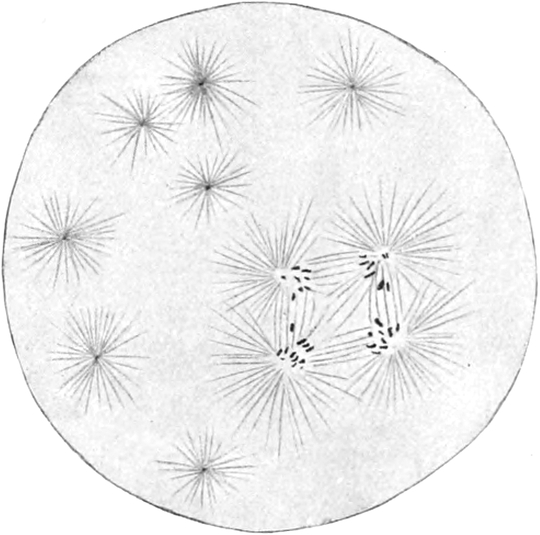
Fig. 16.
Seeigelei mit zahlreichen künstlich durch Einwirkung von Chlormagnesium erzeugten Zentrosomen
. Nach W
ILSON
.
Nach alledem können wir als allgemeine Zellbestandteile einzig und allein das Protoplasma in seiner Gesamtheit und den Zellkern mit seinen Differenzierungen allen speziellen Zellbestandteilen, wie Zellmembranen Stärkekörnern, Pigmentkörnern, Oeltröpfchen, Chlorophyllkörpern, Zentrosomen etc., gegenüberstellen.
3. Mehrkernige Zellen und Syncytien.
Wir hatten vorhin in der organischen Natur fünf Individualitätsstufen voneinander unterschieden; jetzt müssen wir uns aber erinnern, daß in der lebendigen Welt nirgends in Wirklichkeit scharfe Grenzen zu finden sind. Wir hatten die Zellen als Elementarorganismen von der nächst höheren Individualitätsstufe, den Geweben, unterschieden, und es könnte den Anschein haben, als ob in der Tat keine schärfere Grenze existiere, als zwischen einem Gewebe, das aus einer Anzahl gleichartiger Zellen besteht, und einer einzelnen Zelle, als ob beide Individualitätsstufen sehr leicht voneinander zu unterscheiden wären. Allein dem ist in Wirklichkeit nicht so. Es gibt einzelne Organismen, die eine Unterscheidung, ob Elementarorganismen oder Gewebe, nicht leicht erscheinen lassen, und wir werden uns hier, ebenso wie in vielen anderen Fällen, wo es sich darum handelt, in der Natur Grenzen zu ziehen, recht klar bewußt, daß alle Abgrenzungen und Definitionen in letzter Instanz ein mehr oder weniger willkürliches Moment in sich enthalten müssen, wenn sie scharf sein sollen, — daß alle Grenzen und Definitionen nichts als psychologische Hilfsmittel zum Zwecke der Erkenntnis sind.
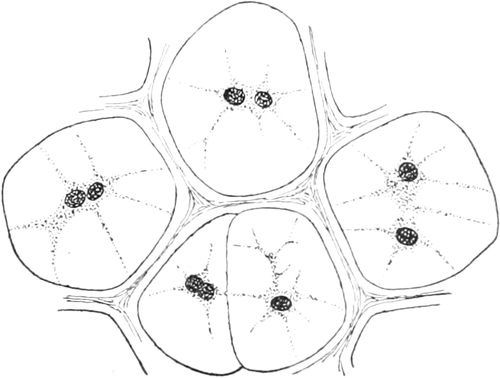
Fig. 17.
Zellknorpel
; die Zellen enthalten zwei Zellkerne.
Die Uebergangsformen zwischen typischen Zellen und echten Geweben sind zahlreich. Sie bestehen darin, daß innerhalb einer einheitlichen Protoplasmamasse mehrere distinkte Zellkerne liegen. In vielen Fällen finden wir in einer Zelle statt des einen Zellkerns, wie er für den Typus einer Zelle charakteristisch ist, deren zwei. So trifft man z. B. sehr häufig in manchen Geweben, wie dem Gewebe des Zellknorpels (Fig. 17), Zellen mit zwei Kernen. Von diesen Zellformen führen Uebergänge, die drei, vier, fünf und mehr Kerne haben, bis zu denjenigen Organismen, die eine ungezählte Menge von Kernen in ihrem Protoplasma bergen. Zellformen mit wenigen Kernen sind z. B. manche Epithelzellen (Fig. 18 a), Zellen mit vielen Kernen die in dem Darm der Frösche parasitisch lebenden großen Wimperinfusorien Opalina (Fig. 18 b), und Formen mit zahllosen Kernen finden wir unter den Meeresalgen, unter denen z. B. Caulerpa (Fig. 19) eine riesige Zelle von der Gestalt und Größe eines Blattes vorstellt, in deren dünner, lamellöser Protoplasmaschicht eine unzählige Menge von Zellkernen liegt, die alle mit dem Protoplasma zusammen in fortwährender, langsam strömender Bewegung zwischen den Zellwänden, d. h. den beiden Blattflächen, begriffen sind.
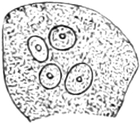
Fig. 18
a
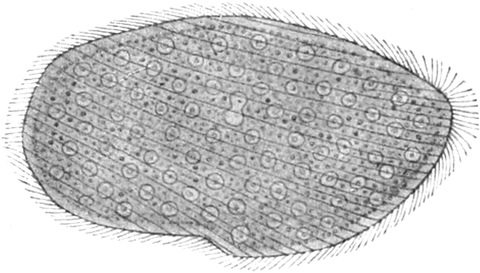
Fig. 18
b
Fig. 18. a Epithelzelle mit mehreren Kernen aus der Harnblase des Menschen. Nach VIRCHOW. b Opalina ranarum, ein einzelliges Wimperinfusor aus dem Darm des Frosches mit vielen Kernen. Nach ZELLER.
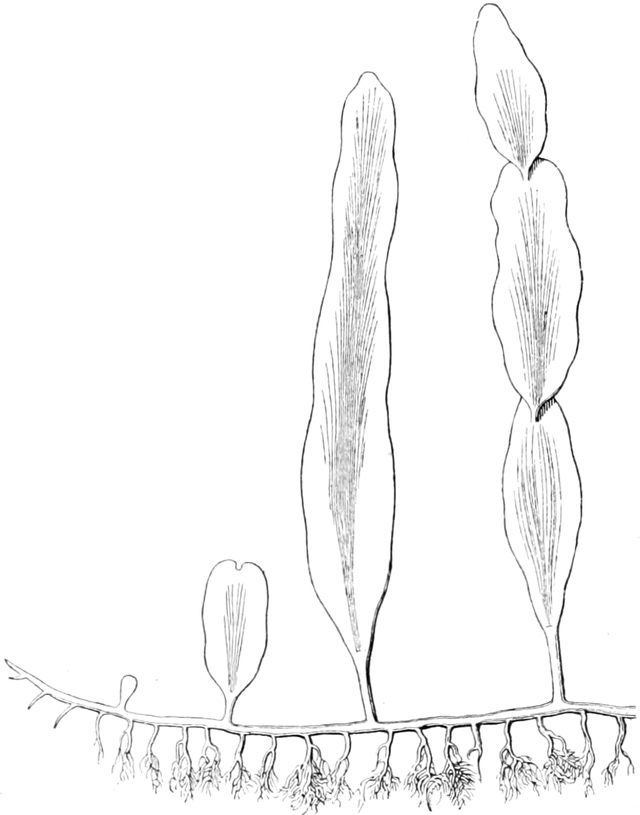
Fig. 19.
Caulerpa
, eine blattförmige Meeresalge. Die einzelnen Blätter sind dünne, zwischen zwei flächenhafte Zellulosewände eingeschlossene Protoplasmalamellen mit zahllosen kleinen, hier nicht sichtbaren Kernen. Natürliche Größe. Nach R
EINKE
.
Alle diese Organismen mit mehreren Zellkernen können wir als mehrkernige Zellen von den vielzelligen Geweben, zu denen sie den Uebergang bilden, trennen, wenn wir das Gewicht bei der Unterscheidung auf den Umstand legen, daß bei den mehrkernigen Zellen das den einzelnen Kern umgebende Protoplasmaterritorium nicht von den benachbarten abgegrenzt ist, sondern mit dem ganzen übrigen Protoplasma zusammen eine einheitliche Masse vorstellt, die nur als Ganzes nach außen hin durch eine bestimmte Oberflächenform abgeschlossen erscheint, während im Gewebe jedes einzelne Protoplasmaterritorium, das zu einem Zellkern gehört, von den benachbarten deutlich abgegrenzt ist. Die vielkernige Zelle stellt also immer noch eine Zelle vor, die als Ganzes durch eine bestimmte Oberflächengestalt charakterisiert ist; das Gewebe aber wird von einer Summe von einzelnen Zellen gebildet, deren jede ihre eigene, mehr oder weniger scharf abgegrenzte Gestalt besitzt.
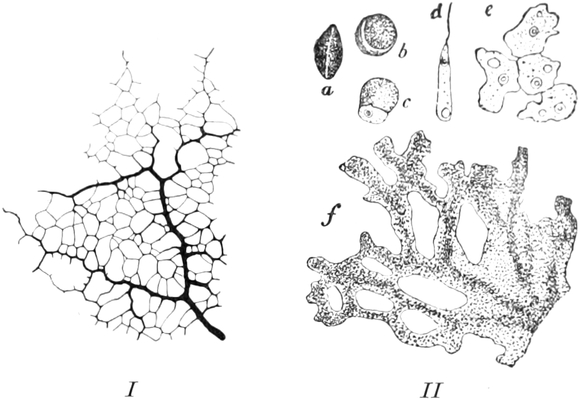
Fig. 20.
I
Aethalium septicum
. Stück eines netzförmigen Myxomyceten-Plasmodiums. Natürliche Größe.
II
Chondrioderma difforme
.
f
Stück eines Plasmodiums,
a
eine Spore,
b
dieselbe quellend,
c
der Sporeninhalt kriecht aus,
d
die Spore hat sich in eine Geißelzelle verwandelt,
e
die Geißelzellen haben sich in Amöben umgebildet, die wieder zur Bildung eines Plasmodiums zusammenkriechen.
II
nach S
TRASBURGER
.
Schwieriger wird die Frage, ob wir es mit vielkernigen Zellen oder mit echten Geweben zu tun haben, bei gewissen niederen Organismen, die von den Botanikern als Pflanzen, von den Zoologen häufig als Tiere in Anspruch genommen worden sind und in vielen Beziehungen großes Interesse verdienen. Das sind die Myxomyceten. Im Laubwalde auf moderigen Blättern oder faulenden Baumstämmen sieht man bisweilen weiße, gelbe oder braunrote Netzwerke, die sich öfter mehrere Dezimeter weit mit ihren feinen, baumartig verzweigten Strängen an der Unterlage ausbreiten (Fig. 20 I). Diese Netzwerke, die auch mitunter dichtere, klumpige Massen von demselben Aussehen bilden, sind, wie man bei näherer Betrachtung findet, von einer weichen, schleimartigen Konsistenz. Beobachtet man ein solches Netzwerk nach einigen Stunden oder am nächsten Tage wieder, so findet man, daß es nicht nur seinen Platz, sondern auch seine Gestalt vollständig verändert hat, und trennt man ein Stückchen davon ab, so kann man, wenn es auf eine Glasplatte gelegt und an einem feuchten Orte gehalten wird, sehen, wie die ganze Masse anfängt, langsam zu fließen und feine Ausläufer nach hierhin und dorthin zu entsenden, die sich baumförmig verzweigen und netzartig zusammenfließen. Kurz, man sieht, daß das ganze Netzwerk lebt. Diese eigentümlichen Wesen sind als Myxomyceten bekannt. Sie bestehen aus vollständig nacktem Protoplasma. In den feinen Strängen ihrer „Plasmodien“ findet man bei mikroskopischer Untersuchung und Färbung eine große Menge von Zellkernen, die fortwährend von dem langsam fließenden Protoplasma mitgeschleppt werden, die über- und untereinanderkugeln und deutlich erkennen lassen, daß sie keine bestimmte Lage besitzen, sondern regellos in der einheitlichen Protoplasmamasse immer wieder ihren Platz wechseln. Hier sind also keine einzelnen Zellterritorien im Protoplasmakörper abgegrenzt. Wir würden daher die Plasmodien nach dem oben gegebenen Kriterium für vielkernige Zellen halten müssen. Indessen in dieser Auffassung werden wir wieder schwankend, wenn wir die Entstehung der Myxomycetenplasmodien verfolgen. Die Myxomyceten pflanzen sich durch „Sporen“ fort, d. h. durch kleine, mikroskopische Kapseln, deren Schale platzt und je einer kleinen, nackten, formwechselnden Zelle mit einem Kern den Austritt gewährt (Fig. 20 II a, b, c). Da von den Sporen immer eine sehr große Menge zusammenliegt, schlüpft gleichzeitig auch immer eine Menge einzelner Zellen aus. Alle diese Zellen kriechen alsbald zusammen, fließen ineinander und bilden so eine größere einheitliche Protoplasmamasse, in der eine Menge von Kernen enthalten ist (Fig. 20 II, e, f). Indem die Protoplasmamasse durch selbständige Ernährung wächst, vermehren sich auch die Kerne durch Teilung, und so entsteht schließlich das große, netzförmig ausgebreitete Myxomyceten-Plasmodium. Dieses Plasmodium, obwohl es eine einheitliche Protoplasmamasse mit vielen Kernen ohne Zellgrenzen vorstellt, ist also trotzdem aus vielen einzelnen Zellen hervorgegangen. Wir haben daher nicht das Recht, die Plasmodien der Myxomyceten als vielkernige Zellen zu betrachten, während wir auf der anderen Seite auch nicht berechtigt sind, sie als echte Gewebe anzusprechen, denn wir finden ja für die einzelnen Kerne keine Zellgrenzen abgesteckt. Man hat daher für diese Zwischenstufen zwischen der einzelnen Zelle und dem Gewebe einen besonderen Namen geschaffen und bezeichnet sie als „Syncytien“.
Solche Syncytien kommen auch im Körper der höheren Tiere an einzelnen Stellen vor. Sie entstehen hier dadurch, daß die Zellen bei der Entwicklung sich nicht vollständig voneinander trennen. Sind die Zellen, die sich im Laufe der Entwicklung durch fortgesetzte Teilung vermehren, vollständig membranlos, so kann natürlich, da sie sich ja bei der Entstehung des Zellenstaates nicht voneinander trennen, keine Abgrenzung ihres Protoplasmakörpers bei der Teilung entstehen. Es teilen sich die Zellkerne und rücken voneinander fort, aber das Protoplasma bleibt eine zusammenhängende Masse. So entstehen Syncytien, wie z. B. bei manchen Epithelien. In anderen Fällen grenzen sich zwar bei der Zellteilung die Protoplasmakörper der Zellen durch deutliche Membranen oder Interzellularsubstanzen voneinander ab, aber diese Abgrenzungen behalten einzelne sehr kleine Lücken, durch welche die Protoplasmakörper mittelst äußerst feiner Protoplasmabrücken untereinander in Zusammenhang bleiben. Solche Zusammenhänge durch Interzellularbrücken haben offenbar eine große physiologische Bedeutung für das gemeinschaftliche Zusammenarbeiten der Zellen des betreffenden Gewebes, und sind daher sehr weit verbreitet im Pflanzenreich sowohl wie im Tierreich. Im Pflanzenreich treten die Interzellularbrücken durch die Tüpfelkanälchen in den Zellulosemembranen hindurch. Im Tierreich verbinden sie Epithelzellen, Muskelzellen, Neurone etc. miteinander.
So finden sich also im Zellenstaate alle möglichen Uebergangsstufen von der schärfsten Abgrenzung der Zellen eines Gewebes bis zum reinen Syncytium mit zusammenhängender protoplasmatischer Grundmasse. Daß dadurch aber der Begriff der Zelle und damit auch die ganze Zellenlehre hinfällig würde, wie früher hin und wieder gelegentlich behauptet worden ist, davon kann gar keine Rede sein. Da ja die Existenz einer Membran nicht zum Wesen der Zelle gehört, so ist es selbstverständlich, daß in solchen Fällen bei der Bildung eines Gewebes durch fortgesetzte Zellteilung die Protoplasmakörper miteinander im Zusammenhang bleiben müssen. Trotzdem hat selbstverständlich jedes um einen Kern herum gelagerte Protoplasmaterritorium mit seinem Zellkern zusammen den Wert einer Zelle.
B. Die morphologische Beschaffenheit der lebendigen Substanz.
1. Form und Größe der Zelle.
Ein Umstand, welcher der konsequenten Durchführung der Zellenlehre in der ersten Zeit am meisten im Wege gestanden hat, und welcher noch jetzt jedem, der sich mit dem feineren Bau der Organismen zu beschäftigen anfängt, die größten Schwierigkeiten bereitet, ist die erstaunliche Verschiedenheit der Form, in welcher der eine einzige Elementarbestandteil des organischen Lebens auftritt. Die Formen der verschiedenartigen Zellen sind so überaus mannigfaltig, daß es dem ungeübten Beobachter nicht selten schwer wird, sich an den Gedanken zu gewöhnen, daß es sich hier nur um verschiedene Modifikationen eines und desselben Elements, eines und desselben Typus handelt. Gegenüber dieser unerschöpflichen Mannigfaltigkeit der verschiedenen Zellenarten unter sich besteht aber anderseits eine sehr weitgehende Konstanz der Form einer und derselben Zellenart, so daß die Zellen irgendeines bestimmten Gewebes des menschlichen Körpers, z. B. der Leber, der Haut, des Knochens, des Blutes etc., immer sofort als solche, d. h. als Leber-, Haut-, Knochen- oder Blutzellen, zu erkennen sind. Einige Beispiele werden die großen Verschiedenheiten in der Form der Zellen am besten illustrieren.
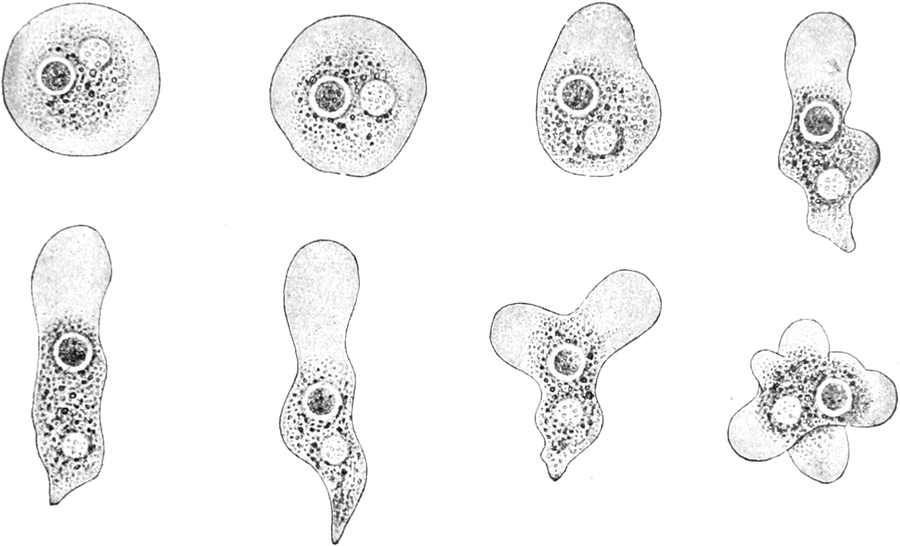
Fig. 21.
Eine Amöbe in verschiedenen Formenstadien beim Kriechen
. Das hyaline Exoplasma fließt immer voran. In der Mitte und hinten liegt das körnige Endoplasma mit dem dunkleren Kern und der blasseren Vakuole.
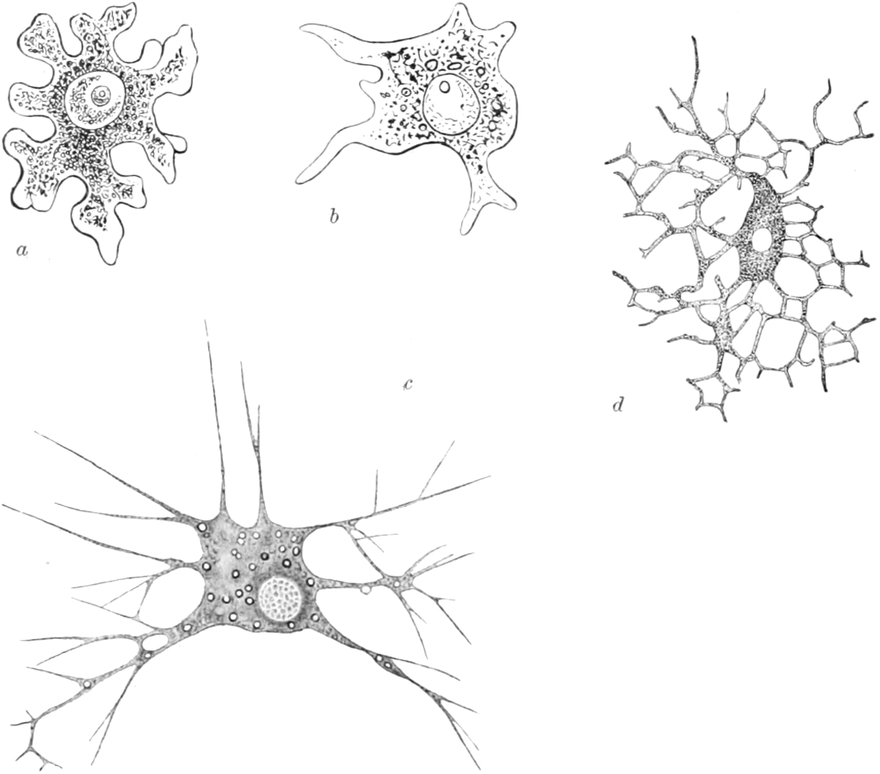
Fig. 22.
a
Eizelle eines Kalkschwammes
. Nach H
AECKEL
.
b
Blutzelle eines Krebses
. Nach
Haeckel
.
c
Biomyxa vagans
, ein Süßwasserrhizopod.
d
Pigmentzelle aus dem Schwanz einer Froschlarve
.
Es gibt eine nicht geringe Zahl von Zellen, die überhaupt keine beständige Form besitzen, sondern ihre Gestalt fortwährend verändern und daher als amöboide Zellen bezeichnet werden. Die amöboiden Zellen haben sämtlich einen nackten Protoplasmakörper, der, von keiner Zellmembran umschlossen, bald hier, bald dort an seiner Oberfläche eine Vorwölbung seiner Körpersubstanz auftreten oder wieder verschwinden läßt und so jeden Augenblick eine andere Gestalt annimmt. Je nach der verschiedenen Zellart haben aber diese Vorwölbungen oder „Pseudopodien“ auch verschiedene Formen, so daß die eine Zellform, wie z. B. die meisten im Süßwasser lebenden Amöben (Fig. 21) oder die Eizellen (Fig. 22 a) mancher Tiere, durch breite lappen- oder fingerförmige, die andere, wie z. B. die Leukocyten (Fig. 22 b) oder farblosen Blutzellen, durch spitze, zerfetzte, wieder andere, wie viele Rhizopoden (Fig. 22 c) oder die Pigmentzellen (Fig. 22 d) durch fadenförmige und netzförmig untereinander zusammenfließende Pseudopodien charakterisiert sind.
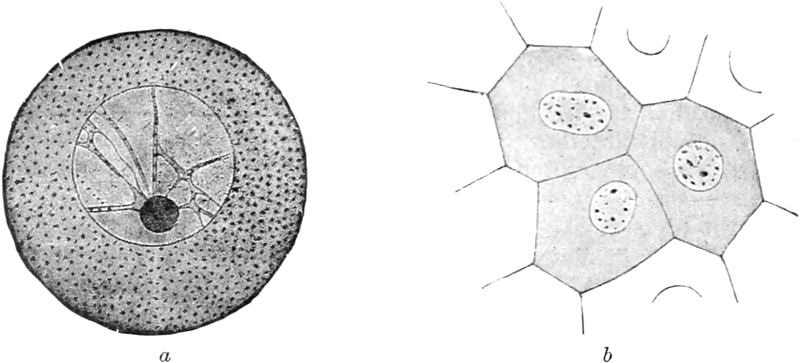
Fig. 23.
a
Eizelle aus dem Eierstock eines Seeigels
. Nach H
ERTWIG
.
b
Epidermiszellen vom Frosch.
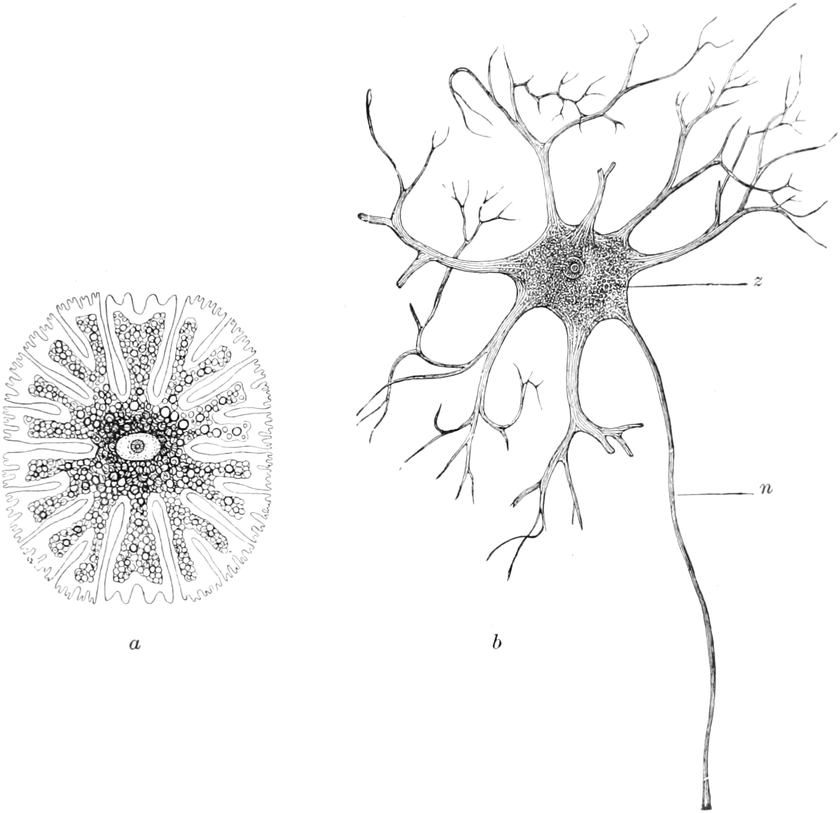
Fig. 24.
a
Euastrum
, eine einzellige Alge aus der Gruppe der Desmidiaceen. Nach H
AECKEL
.
b
Ganglienzelle
aus dem Rückenmark des Menschen. Nach G
EGENBAUR
.
z
Zellkörper,
n
Nervenfortsatz (Achsenzylinderfortsatz).
Die überwiegende Mehrzahl der Zellen besitzt dagegen eine beständige Form, sei es, daß das Protoplasma von einer Zellmembran umkleidet ist oder nicht. Die einfachste Zellform, die als Typus des Elementarorganismus betrachtet werden kann, ist jedenfalls die Kugelform, wie sie unter anderen bei vielen Eizellen (Fig. 23a) und einzelligen Algen zum Ausdruck kommt. Von diesem Typus finden sich Abweichungen nach den verschiedensten Richtungen. Schon dadurch, daß die Zellen in den Verband mit anderen ihresgleichen treten, was ja in jedem Gewebe der Fall ist, wird ihre Gestalt durch den Druck, dem sie von seiten der Nachbarzellen ausgesetzt sind, beeinflußt. Eine Zelle, die an sich rund ist, muß daher im Gewebe nach einfachen mechanischen Gesetzen schon eine polyedrische Gestalt annehmen, so etwa wie Erbsen, die man dicht gedrängt in eine Flasche getan hat und quellen läßt, ihre runde Gestalt verlieren und polyedrisch werden. In der Tat kommt die polyedrische Gestalt der Zellen gerade in Geweben, besonders bei Haut- (Epithel-) (Fig. 23 b) und Drüsenzellen sehr häufig vor. Dann aber ist ein wesentliches Moment, das eine Abweichung vom runden Typus herbeiführt, die Ausbildung beständiger Fortsätze über die Oberfläche hinaus. Dadurch kommen oft ganz dieselben Zellgestaltungen als beständige Formen zustande, wie sie amöboide Zellen vorübergehend zeigen. Die grüne Algenzelle von Euastrum (Fig. 24 a) repräsentiert eine solche Zelle mit formbeständigen lappigen Fortsätzen, und die in unserem Zentralnervensystem, im Gehirn und Rückenmark liegenden Ganglienzellen, die den Nervenfasern ihren Ursprung geben, besitzen dauernd Ausläufer und Fortsätze, die genau wie die Pseudopodien mancher Rhizopodenzellen aussehen (Fig. 24 b). Andere Zellen, die Wimperzellen, haben an ihrer Oberfläche bewegliche, aber dauernd vorhandene Fortsätze von der Gestalt der Augenwimpern. Diese Wimperzellen sind ungemein verbreitet und kommen nicht nur in Geweben als Flimmerepithelzellen (Fig. 25 a) vor, sondern auch freilebend, das große Heer der Ciliaten oder Wimperinfusorien und der Flagellaten oder Geißelinfusorien bildend, je nachdem der einzellige Körper viele, sei es gleiche, sei es verschiedenartig differenzierte Wimperhaare besitzt (Fig. 25 b) oder nur einen oder wenige Geißelfäden trägt (Fig. 25 c). Schließlich haben wir Zellen, die vom Typus dadurch abweichen, daß sie nach einer Richtung hin enorm in die Länge gezogen sind, so daß sie als schmale, band- oder fadenförmige Gebilde erscheinen. Extreme in dieser Richtung sind die glatten und quergestreiften Muskelzellen (Fig. 26 a) sowie manche Spermatozoen (Fig. 26 b).
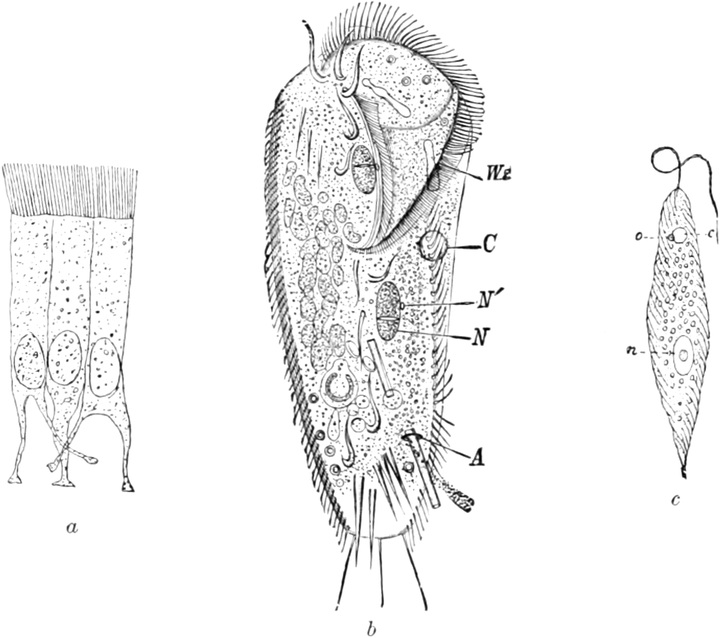
Fig. 25.
a
Flimmerepithelzellen
. Nach S
CHIEFFERDECKER
.
b
Stylonychia mytilus
, eine Wimperinfusorienzelle mit verschiedenartig differenzierten Wimpern,
Wz
Mund-Wimperzone,
C
kontraktile Vakuole,
N
Makronucleus,
N′
Mikronucleus,
A
Afteröffnung. Nach S
TEIN
.
c
Euglena viridis
, eine Geißelinfusorienzelle mit einer einzigen Geißel.
n
Kern,
o
Augenfleck,
c
Vakuole. Nach S
TEIN
.
Gegenüber der erstaunlichen Formenmannigfaltigkeit der Zellen muß es auffallen, daß die Größe der Zellen nur innerhalb verhältnismäßig enger Grenzen schwankt. Es ist eine sehr bemerkenswerte Tatsache, daß bei weitem die Mehrzahl aller Zellen mikroskopisch klein ist. Wohl bewegt sich die Größe der Organismen innerhalb enorm weiter Grenzen von der verschwindenden Kleinheit des Bakteriums, das nur wenige Tausendstel eines Millimeters mißt, bis zu der imponierenden Masse eines Elefanten oder bis zur gewaltigen Ausdehnung eines amerikanischen Mammutbaumes. Niemals aber finden wir, daß größere Organismen nur aus einer einzigen Zelle beständen. Nur sehr wenige Zellformen erreichen, wenn sie einen klumpigen Protoplasmakörper haben, einen Durchmesser von wenigen Millimetern, und bei diesen wenigen Zellen, die eine solche Größe besitzen, werden wir bald auf die Tatsache aufmerksam, daß sie einen amöboiden Protoplasmakörper haben, dessen Oberfläche sich fortwährend verändert, dessen Substanz fortwährend in strömender Bewegung begriffen ist. Die Tatsache, daß klumpige Zellen, deren Radius nach allen Dimensionen ungefähr gleich groß ist, und deren Protoplasma sich nicht in fortwährender Strömung befindet, niemals die Größe von wenigen Millimetern überschreitet, erleidet nur scheinbare Ausnahmen. Man könnte z. B. als eine solche Ausnahme die Eizelle der Vögel geltend machen. Bekanntlich repräsentiert das Ei eines Huhnes anfangs noch eine einzige Zelle. Ein Straußenei würde demnach eine einzige riesige, klumpige Zelle sein, die scheinbar der angeführten Regel widerspräche. Indessen, diese Ausnahme ist, wie gesagt, nur scheinbar, denn das wirklich aktive oder lebendige Protoplasma der Eizelle besitzt nur eine sehr geringe Größe und ist nur in Form einer äußerst dünnen und zarten Lamelle der übrigen Masse aufgelagert, die ihrerseits ganz allein von dem untätigen Eidotter, dem Nährmaterial für die sich weiter entwickelnde und fortpflanzende Zelle, gebildet wird. Also hier haben wir in Wirklichkeit gar keine solide, klumpige Masse lebendiger Substanz, sondern nur eine dünne Lamelle, und eine solche ein- oder zweidimensionale Größenentwicklung liegt auch bei allen anderen Zellen vor, die, wie z. B. die oft über dezimeterlangen, quergestreiften Muskelzellen der Beinmuskeln oder die in mehr als meterlange Nervenfäden auslaufenden Ganglienzellen oder die blattförmigen Zellen der Caulerpa, die gewöhnliche Größe überschreiten. Was bei allen diesen Tatsachen aber zum Ausdruck kommt, ist der Umstand, daß das Verhältnis von Masse zu Oberfläche der Zelle eine gewisse Größe niemals überschreitet. Wie wir später sehen werden, ist diese Tatsache tief im Wesen der lebendigen Substanz begründet, und die Entstehung eines großen massigen Organismus ist überhaupt nur möglich durch Aufbau aus sehr kleinen autonomen Elementen, wie es die Zellen sind.
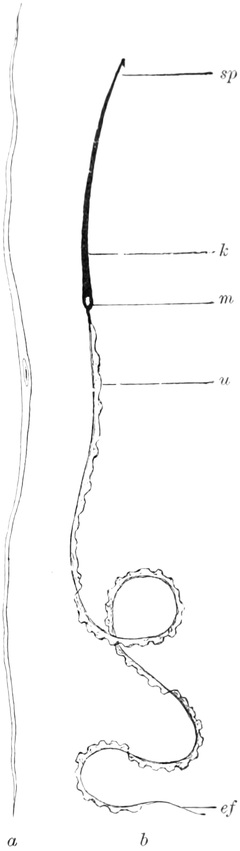
Fig. 26.
a
Glatte Muskelzelle
. Nach S
CHIEFFERDECKER
.
b
Spermatozoenzelle von Salamandra maculata
. Nach H
ERTWIG
.
k
Kopf,
sp
Spitze,
m
Mittelstück,
u
undulierende Membran,
ef
Endfaden.
2. Das Protoplasma.
Es ist häufig der Fehler begangen worden, daß man das Protoplasma als eine chemisch einheitliche Substanz betrachtet hat. Dieser Auffassung liegt ein doppelter Irrtum zugrunde. Der Begriff Protoplasma, wie ihn die älteren Zellforscher geschaffen haben, ist einerseits gar kein chemischer, sondern ein morphologischer Begriff, und anderseits umfaßte er den ganzen Inhalt der Zelle mit Ausnahme des Kerns. Dieser Zellinhalt ist aber weder in chemischem noch in morphologischem Sinne eine einheitliche Substanz, sondern ist ein Gemisch von vielen, teils flüssigen und gelösten, teils festeren und geformten Bestandteilen, und es muß immer wieder darauf aufmerksam gemacht werden, daß eine Einschränkung des Begriffs Protoplasma auf gewisse Bestandteile der Zelle schon deshalb durchaus unstatthaft ist und zu ganz schiefen Konsequenzen führt, weil es durchaus falsch wäre, den einen oder den anderen Bestandteil als nebensächlich aus dem Begriff auszuscheiden. Die konditionale Betrachtungsweise, die nicht eine einzige „Ursache“ der Lebensvorgänge kennt, weiß auch nichts von einer einzigen chemischen Verbindung, an die das Leben geknüpft wäre. Sie kennt nur eine große Menge von notwendigen Bedingungen und so sind denn auch alle die Stoffe, die im Protoplasma vorhanden sind und am Lebensvorgang in irgendeiner Weise teilnehmen, solche inneren Bedingungen des Lebens, die alle gleichwertig sind, weil sie eben notwendig sind zum Zustandekommen des Lebens. Der Begriff Protoplasma ist daher unter allen Umständen in dem ursprünglichen Sinne als ein morphologischer Sammelbegriff aufrecht zu erhalten; das Protoplasma ist eine Summe, ein Gemisch der verschiedensten Substanzen. Mag man nach und nach immer mehr die einzelnen Bestandteile, welche das Protoplasma zusammensetzen, morphologisch und chemisch charakterisieren, mag man immerhin bestimmten hochkomplizierten organischen Verbindungen eine zentrale Stellung anweisen im Lebensprozeß, der Begriff Protoplasma als Sammelbegriff wird dadurch nicht beseitigt werden. Welche verschiedenartigen Leistungen die einzelnen Stoffe im Lebensprozeß der Zelle vollziehen, ist eine ganz andere Frage, die den Begriff Protoplasma nicht berührt.
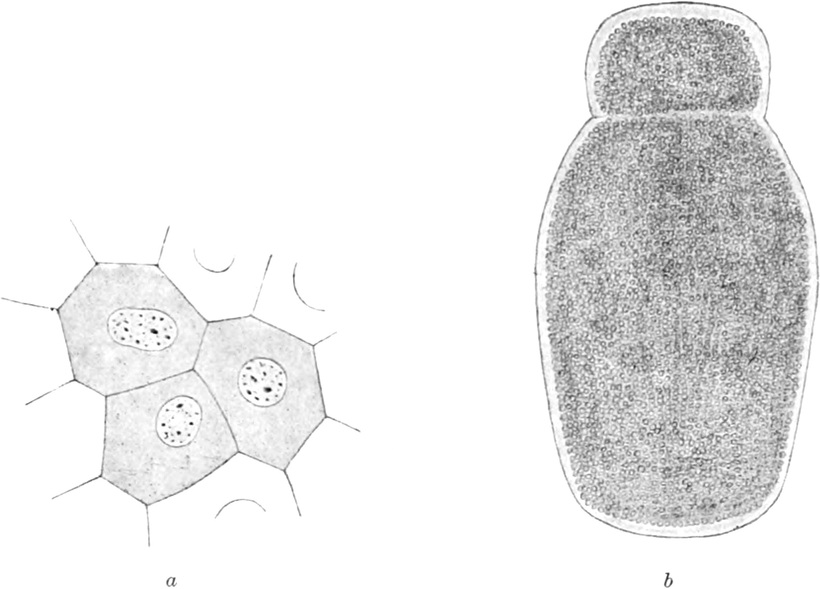
Fig. 27.
a
Epidermiszellen
vom Frosch. Die lebendige Substanz erscheint vollkommen hyalin.
b
Clepsidrina blattarum
, eine einzellige Gregarine aus dem Darm der Küchenschabe. Das Protoplasma ist ganz mit Körnchen angefüllt.
Wenn wir den Inhalt des Protoplasmas untersuchen, so können wir bei oberflächlicher Betrachtung schon zwei Gruppen von Bestandteilen unterscheiden, einerseits verschiedene einzeln abgegrenzte Körper, wie Körner, Tröpfchen usw., und anderseits eine gleichmäßige, zähflüssige, homogen erscheinende Grundmasse, in der die ersteren ebenso wie der Zellkern eingebettet liegen. Während aber in manchen Zellen die Grundmasse keine oder nur wenige Einlagerungen geformter Körper zeigt, wie z. B. bei vielen Epithelzellen (Fig. 27 a), ist in anderen vor lauter körnigen Bestandteilen die homogene Grundmasse kaum zu sehen, wie das bei manchen Pflanzenzellen und besonders ausgeprägt bei gewissen parasitär lebenden einzelligen Organismen, den Gregarinen (Fig. 27 b), häufig vorkommt.
a) Die geformten Bestandteile des Protoplasmas.
Fassen wir zuerst die geformten Bestandteile des Protoplasmas ins Auge, so sind es körperliche Elemente der allerverschiedensten Natur, die aber sämtlich spezielle Zellbestandteile sind, also nicht in allen Zellen vorkommen. Wir finden darunter Körper, die für das Leben der betreffenden Zelle, in der sie enthalten sind, unbedingt notwendig sind, Stoffe, die gewissen Zellen geradezu ein charakteristisches Gepräge aufdrücken; wir finden aber auch Bestandteile, die im Lebensprozeß nicht weiter Verwendung finden, wie z. B. unverdauliche Reste der Nahrung. Wir stoßen ferner auf Nahrungsbestandteile, die noch nicht verändert sind; wir bemerken aber auch Stoffe, die aus der Nahrung durch den Lebensprozeß bereits in bestimmter Weise umgewandelt oder sogar neu gebildet und als Reservematerialien aufgespeichert worden sind, und schließlich treffen wir in manchen Zellen ganz konstant selbständige Organismen, die als Symbionten oder Parasiten in ihnen dauernd leben und unter Umständen eine gewisse Rolle im Lebensprozeß der Zelle spielen können.
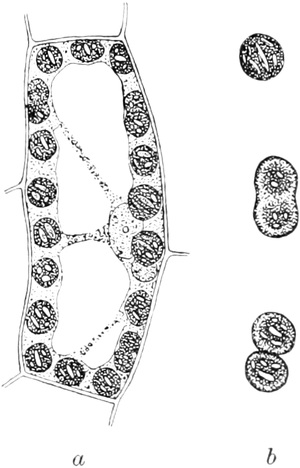
Fig. 28.
a
Eine Pflanzenzelle mit Chlorophyllkörpern
.
b
Ein Chlorophyllkörper in Teilung begriffen. Nach S
ACHS
.
Unter den geformten Protoplasmabestandteilen, die eine unentbehrliche Bedeutung im Leben der betreffenden Zelle haben, die daher als Organe der Zelle oder, da wir unter Organ ein aus vielen Zellen zusammengesetztes Gebilde verstehen, besser als „Organoide“ der Zelle aufgefaßt werden können, sind besonders wichtig die Chlorophyllkörper der Pflanzenzellen. Diese kleinen, meist rundlichen, bisweilen auch bandförmigen Körper, die in der Grundmasse des Protoplasmas eingebettet liegen (Fig. 28), sind es, die der Pflanzenzelle und damit der ganzen Pflanze ihre prachtvolle grüne Farbe geben, denn ihr weicher, aus Eiweißverbindungen bestehender Körper enthält einen intensiv grünen Farbstoff. Die Chlorophyllkörper sind unentbehrlich für das Leben der Pflanzenzelle, denn in ihnen läuft ein bedeutsamer Teil des Lebensprozesses ab, der die Pflanzenzelle charakterisiert. Andere Organoide der Zelle, die ebenfalls ein bedeutsames Glied im Zellleben bilden, stellen die Flüssigkeitstropfen oder Vakuolen, wie sie gewöhnlich, wenn auch wenig treffend, genannt werden, vor. Unter den Vakuolen lassen sich zwei Arten unterscheiden. Es gibt Flüssigkeitstropfen, die nur gelegentlich einmal im Protoplasma sich an einer Stelle ansammeln, wo gerade eine Wasser anziehende Substanz gelegen ist; es gibt aber auch Vakuolen, die dauernd existieren und häufig in so großer Menge im Protoplasma vorhanden sind, daß die Grundsubstanz des Protoplasmas ganz gegen sie zurücktritt und nur noch dünne Wände für die Vakuolen abgibt, so daß das Protoplasma förmlich ein schaumiges Aussehen erhält, wie z. B. bei manchen Pflanzenzellen (Fig. 29 a, b, c) und Radiolarien (Fig. 29 d). Zu den konstanten Vakuolen, die als Zellenorganoide dienen, gehören schließlich die sogenannten kontraktilen oder pulsierenden Vakuolen, Flüssigkeitstropfen, die meist rhythmisch im Protoplasma verschwinden und wieder an derselben Stelle entstehen, indem die Flüssigkeit sich rhythmisch mit dem Protoplasma mischt und wieder sammelt. Manche dieser pulsierenden Vakuolen haben komplizierte Abzugskanäle und eine dauernd bestehende Wandschicht, wie das z. B. bei vielen einzelligen freilebenden Organismen, besonders den Wimperinfusorien, der Fall ist (Fig. 30).
Neben solchen dauernd bestehenden Formelementen des Protoplasmas trifft man nun in vielen Zellen geformte Bestandteile, die nur vorübergehend als solche vorhanden sind. Hierhin gehören vor allem die Nahrungskörper, welche in Zellen zu finden sind, die sich durch Aufnahme geformter Nahrungsbestandteile ernähren. Einzellige, nackte Organismen, wie Amöben, weiße Blutzellen, Infusorienzellen und andere, zeigen in ihrem Körperinhalt nicht selten kleine Algen, Bakterien, Infusorien, die sie von außen her aufgenommen haben (Fig. 31 I), und die zuweilen kaum von anderen geformten Bestandteilen des Protoplasmas zu unterscheiden sind. Diese Nahrungsorganismen werden allmählich verdaut und verschwinden dann als geformte Protoplasmabestandteile.
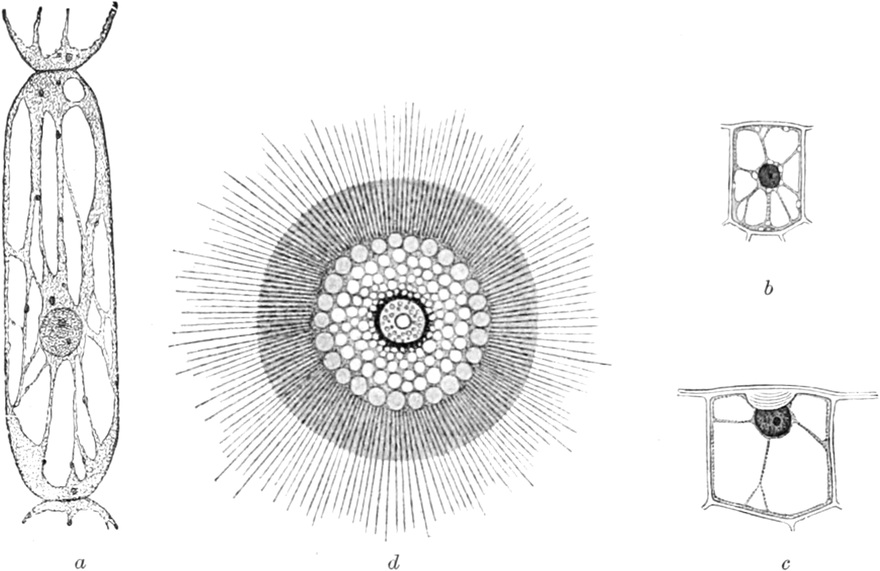
Fig. 29.
a
Pflanzenzelle
aus einem Staubfadenhaar von
Tradescantia
. Nach S
TRASBURGER
.
b
und
c
Pflanzenzelle mit großen Vakuolen. Nach H
ABERLANDT
.
d
Thalassicolla nucleata
, eine Radiolarienzelle.
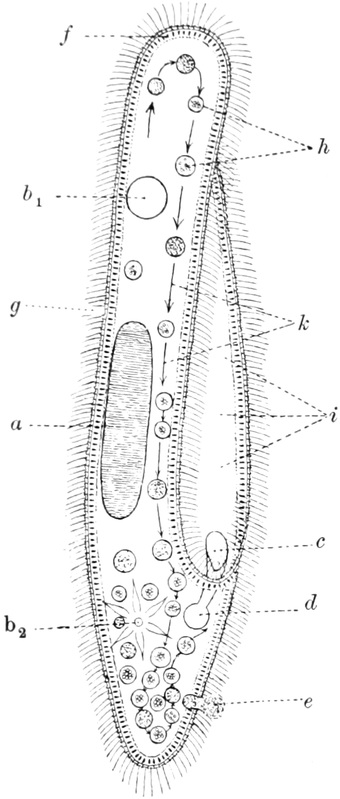
Fig. 30.
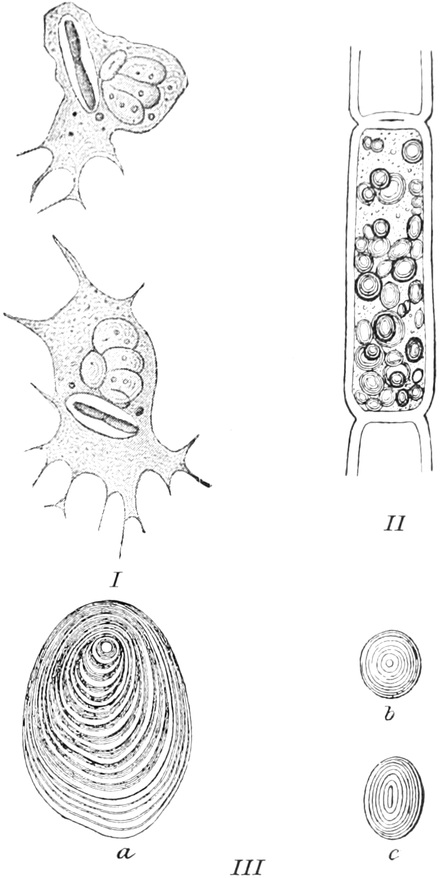
Fig. 31.
Fig. 30. Paramaecium aurelia, eine Wimperinfusorienzelle. b1 und b2 die beiden alternierend pulsierenden Vakuolen, von denen b1 gerade im Stadium der Diastole, b2 im Stadium der Systole sich befindet. Bei b2 sind die radiären Kanäle deutlich zu sehen. Die übrigen Buchstaben bezeichnen: a den Zellkern (Makronucleus), c den Zellmund, d den Zellpharynx, e den Zellafter, f die Trichocysten, g die Basalkörperchen der Wimpern, h Nahrungsballen, die mit dem Protoplasma in der Richtung der Pfeile k zirkulieren, und i das Peristomfeld. Nach einer Zeichnung von A. PÜTTER.
Fig. 31. I Leukocyten oder weiße Blutzellen vom Frosch, die ein Bakterium enthalten. Nach METSCHNIKOFF. II Pflanzenzelle mit Stärkekörnern. III Stärkekörner isoliert. a von der Kartoffel, b vom Mais, c von der Erbse.
Dafür treten als Produkte der Nahrungsumwandlung, sowohl bei Zellen, die geformte, als auch bei Zellen, die nur flüssige Nahrung aufnehmen, häufig wieder bestimmte, meist rundliche Körnchen im Zellkörper auf, Körnchen der allerverschiedensten Natur (Fig. 7), die ALTMANN zum Teil unter dem Namen Granula zusammengefaßt hat, und die er, wie wir bereits oben sahen, für die Elementarorganismen, die letzten lebendigen Elemente der Zelle, hält. Der größte Teil dieser Stoffwechselprodukte der lebendigen Substanz, die in Form von Granulis den Protoplasmakörper zusammensetzen helfen, ist seiner chemischen Natur und seiner Bedeutung nach noch nicht bekannt. Dagegen sind andere sehr genau charakterisiert und leicht zu erkennen, wie z. B. die konzentrisch geschichteten Stärkekörnchen in den Pflanzenzellen (Fig. 31 II und III), die Fetttröpfchen in den Zellen der Milchdrüsen, die Glykogenkörnchen in den Leberzellen, die Pigmentkörnchen in den Pigmentzellen der Haut vieler gefärbter Tiere (Fig. 22 d), die aus Eiweiß bestehenden Aleuronkörner in den Zellen keimender Pflanzensamen, die Kristalle von Kalkoxalat in Pflanzenzellen, von Guaninkalk in Pigmentzellen und viele andere, deren spezielle Aufzählung zu weit führen würde.
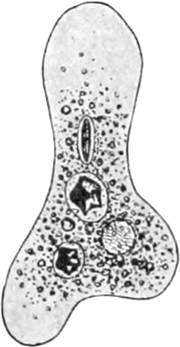
Fig. 32.
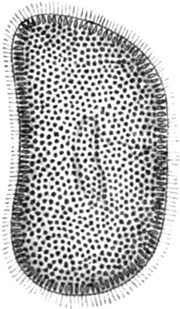
Fig. 33.
Fig. 32. Amöbenzelle, die eine Diatomeenschale und zwei Sandkörnchen in ihrem Protoplasma enthält.
Fig. 33. Paramaecium bursaria, eine Wimperinfusorienzelle, deren Exoplasma mit kleinen parasitären Algenzellen (Zoochlorellen) erfüllt ist.
Eine vierte Gruppe von geformten Elementen finden wir im Inhalt mancher Zellen. Elemente, die am Lebensprozeß der Zelle überhaupt nicht oder nicht mehr beteiligt sind. Das sind die gelegentlich aufgenommenen unverdaulichen Körper, wie Sandkörnchen (Fig. 32), die man in manchen Amöben trifft, ferner die unverdaulichen Reste der Nahrungsstoffe, wie Schalen, Skelette, Hülsen von Nahrungsorganismen, und endlich die Exkretstoffe, die als unbrauchbare Nebenprodukte oder als Endprodukte des Stoffwechsels noch eine Zeitlang im Zellkörper verharren, und nach und nach ausgeschieden werden.
Schließlich sind unter den geformten Elementen des Protoplasmas in gewissen Zellen, besonders im Wasser lebender Tiere, nicht selten symbiotische oder parasitäre einzellige Organismen, die zwar genau genommen nicht zum Protoplasma der betreffenden Zelle gehören, die aber in einzelnen Fällen eine wichtige Rolle im Leben ihres Wirtes spielen. Solche symbiotische Organismen sind vor allem manche Algen, die Zooxanthellen und Zoochlorellen, über deren Natur als selbständige Organismen lange Zeit gestritten worden ist. Sie finden sich zahlreich in den Zellen niederer Tiere und besonders vieler Infusorien und Radiolarien, denen sie durch die Tätigkeit ihrer Chlorophyllkörper den Sauerstoff liefern, so daß ihre Wirte in ihrer Atmung in hohem Grade unabhängig von dem Sauerstoffgehalt des Mediums werden, in dem sie leben (Fig. 33).
Wir wollen hier nicht in ermüdender Aufzählung jedes einzelne geformte Element anführen, das in dieser oder jener Zelle anzutreffen ist. Eine solche Liste würde viele Druckseiten füllen müssen. Es kommt uns hier nur darauf an, zu sehen, wie verschiedener Natur die geformten Bestandteile des Protoplasmas sind, die in einzelnen Zellen auftreten können, und wie unberechtigt es daher ist, das Protoplasma als eine einheitliche Substanz aufzufassen. Verlassen wir also die Reihe der geformten Protoplasmaelemente, und wenden wir uns zur Betrachtung der homogenen Grundsubstanz.
b) Die Grundsubstanz des Protoplasmas.
Wie bereits bemerkt, erscheint die Grundsubstanz des Protoplasmas, in der die Granula etc. eingebettet sind, bei oberflächlicher Betrachtung vollständig homogen. Man kann das am besten an solchen Zellen sehen, die in ihrer Grundsubstanz nur wenig geformte Bestandteile eingelagert enthalten, besonders bei vielen Amöben, jenen freilebenden, am Boden stehender Gewässer umherkriechenden Zellen, deren nackte, fortwährend ihre Form wechselnde Protoplasmakörper die niedrigsten und einfachsten Organismen vorstellen, die überhaupt unsere Erdoberfläche bewohnen. Diese interessanten Elementarorganismen bilden in der Regel völlig granulafreie Vorwölbungen oder Pseudopodien (Scheinfüße) an ihrer Oberfläche von breiter, finger- oder lappenförmiger Gestalt, die vollkommen hyalin und strukturlos erscheinen (Fig. 21, p. 87 und Fig. 34). In der Tat ist wohl auch bei den Amöben das hyaline Protoplasma nicht selten vollkommen strukturlos. Wenigstens haben alle bisherigen Untersuchungen, die mit den besten mikroskopischen Untersuchungsmitteln vorgenommen worden sind, keinerlei Struktur erkennen lassen.
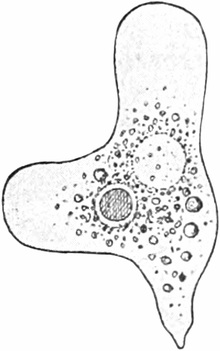
Fig. 34.
Amöbenzelle
mit vollkommen hyalinem und homogenem Pseudopodien-Protoplasma. Neben dem Kern liegt im Endoplasma eine blasse, kontraktile Vakuole (Flüssigkeitstropfen).
Aber die wirkliche Homogenität der Grundsubstanz des Protoplasmas ist jedenfalls nicht die Regel, vielmehr zeigt sich bei Anwendung starker Vergrößerungen, daß die überwiegende Mehrzahl aller Zellen in ihrer scheinbar homogenen Grundmasse in Wirklichkeit eine äußerst feine und charakteristische Struktur besitzt.
Schon 1844 hatte REMAK[44] beobachtet, daß nicht nur die Nervenfäden, sondern auch die Ganglienzellen des Zentralnervensystems eine sehr feine faserige oder fibrilläre Struktur erkennen lassen, eine Beobachtung, die von einer großen Reihe von Forschern, besonders MAX SCHULTZE[45], und in neuerer Zeit von APÁTHY[46] und BETHE[47] bestätigt und erweitert wurde. Später fand man auch in einzelnen anderen Zellen, in Drüsenzellen, Epithelzellen, Muskelzellen etc., eine streifige Struktur des Protoplasmas, und so bildete sich bei einzelnen Forschern die Vorstellung heraus, daß eine fibrilläre Struktur des Protoplasmas weit verbreitet wäre, eine Ansicht, die noch heute besonders von FLEMMING, BALLOWITZ und CAMILLO SCHNEIDER vertreten wird.
Indessen schon früh erfuhr diese Lehre vom fibrillären Bau des Protoplasmas eine Modifizierung. FROMMANN besonders hat seit 1867 in einer langen Reihe von Arbeiten zu zeigen gesucht, daß die feinere Struktur des Protoplasmas aller Zellen nicht eigentlich eine fibrilläre, sondern eine netzförmige sei, eine Ansicht, die fast gleichzeitig auch von HEITZMANN aufgestellt wurde und bald eine weitere Verbreitung fand. Nach dieser Vorstellung soll das Protoplasma ein Netzwerk oder besser ein Maschenwerk bilden, dessen Knotenpunkte uns als einzelne Körnchen erscheinen. Das ganze Maschenwerk der Zelle ist nach außen offen, und zwischen seinen Fäden befindet sich eine Flüssigkeit, die aber von der Flüssigkeit des Mediums, in dem die Zelle lebt, also vom Wasser oder von den Körpersäften etc., verschieden ist. Es ist schwer, sich eine Vorstellung davon zu machen, wie es die Anhänger der Lehre von der Netzstruktur des Protoplasmas für möglich halten, daß sich die innere Zellflüssigkeit bei membranlosen Zellen, wie es die Leukocyten des Blutes und die Amöben sind, an denen gerade die Netzstruktur von HEITZMANN sehr eingehend geschildert worden war, trotz ihres großen Wassergehalts nicht fortwährend mit dem umgebenden Medium mischt. Versuche, membranlose lebendige Protoplasmamassen mit bestimmten Farbstofflösungen zu färben, zeigen jedenfalls deutlich, daß die Färbeflüssigkeit nicht in das lebendige Protoplasma eindringt. Diese und ähnliche Schwierigkeiten, die sich aus der Auffassung des Protoplasmas als eines nach allen Seiten hin offenen Maschenwerks ergeben, haben denn auch viele Forscher zu einer sehr ablehnenden Haltung gegenüber der Lehre von der Netzstruktur des Protoplasmas veranlaßt, obwohl von verschiedenen Seiten das netzförmige Aussehen des Protoplasmas vieler Zellen bestätigt wurde.
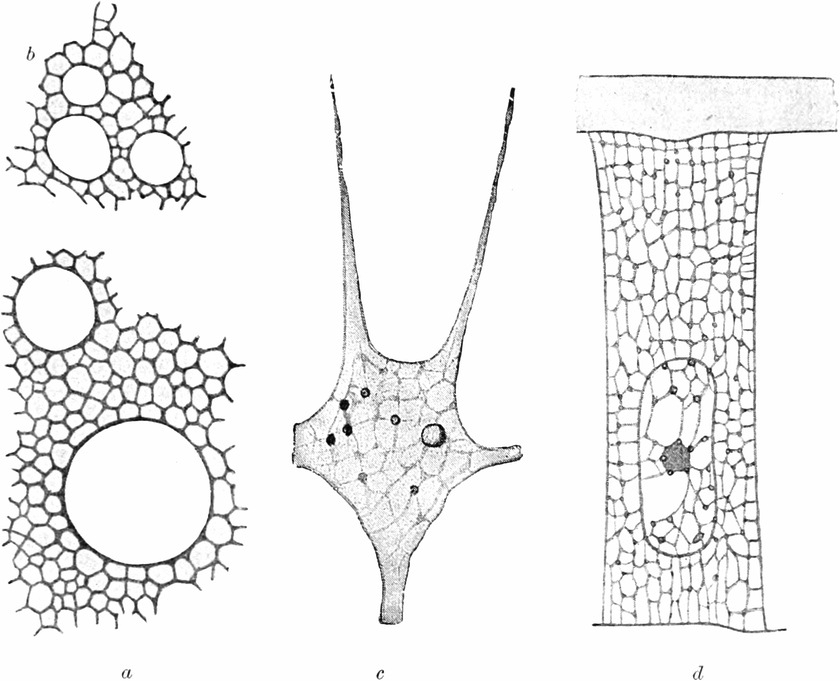
Fig. 35.
a
Schaumstruktur im intrakapsulären Protoplasma von Thalassicolla nucleata
.
b
Schaum aus Olivenöl und Rohrzucker
.
c
Protoplasmastruktur auf einer Pseudopodienausbreitung einer Foraminiferenzelle (Miliola)
.
d
Protoplasmastruktur einer Epidermiszelle des Regenwurms
. Nach B
ÜTSCHLI
.
Erst die ausgezeichneten Untersuchungen, mit denen BÜTSCHLI[48] vor einer Anzahl von Jahren die wissenschaftliche Welt überrascht hat, haben uns vollständige Klarheit über die wirkliche Beschaffenheit der so vielfach beobachteten Protoplasmastrukturen gegeben. Betrachtet man das Protoplasma einer Zelle, die so viele Vakuolen oder Flüssigkeitstropfen einschließt, daß ihr Inhalt ein schaumiges Ansehen besitzt, mit stärkeren Vergrößerungen unter dem Mikroskop, so erhält man nicht das Bild vieler dichtgedrängter Vakuolen oder Blasen, sondern das Bild eines Netzwerkes, dessen Fäden die Querschnitte der dünnen Vakuolenwände bilden. Es liegt das daran, daß man mit starken Vergrößerungen immer nur Flächen, nie Körper sehen kann. Das Mikroskop zeigt von Körpern immer nur optische Querschnitte. Der optische Querschnitt durch einen Schaum aber stellt ein Netzwerk vor. So kommt es, daß stark vakuolisiertes Protoplasma bei stärkeren Vergrößerungen als Netzwerk erscheint. Diese Tatsache führte BÜTSCHLI zu der Ueberzeugung, daß auch das feine netzförmige Aussehen des bei schwacher Vergrößerung homogen erscheinenden Protoplasmas, wie es bei so vielen Zellen bereits beobachtet worden war, nur der optische Ausdruck einer äußerst feinblasigen Schaumstruktur sei. Um diese Frage zu entscheiden, versuchte BÜTSCHLI mikroskopische Schäume künstlich herzustellen von gleicher Feinheit wie die fraglichen Protoplasmastrukturen, und das gelang ihm in der wünschenswertesten Weise. BÜTSCHLI benutzte zu diesen Versuchen Oel, das mit Pottasche oder Rohrzucker sehr fein verrieben worden war. Kleine Tröpfchen von diesem Oelbrei, auf einer Glasplatte in einen Wassertropfen gesetzt, mit einem Deckgläschen bedeckt und unter dem Mikroskop beobachtet, nahmen alsbald eine äußerst feinschaumige Struktur an, indem die Pottaschen- oder Rohrzuckerteilchen, die fein in dem Oeltröpfchen verteilt waren, durch das Oel hindurch auf dem Wege der Diffusion Wasserteilchen von außen her anzogen, so daß sich sehr feine Wassertröpfchen um sie herum dichtgedrängt im Oeltropfen ansammelten und diesen in einen überaus feinen Oelschaum verwandelten. Die auf diese Weise gewonnenen Oelschäume zeigten nun eine so auffallende Uebereinstimmung mit der Struktur des Protoplasmas, daß sie kaum davon zu unterscheiden waren. Die umstehenden Figuren 35 a und b, die von BÜTSCHLI entlehnt sind, lassen die völlige Identität in der Struktur beider Objekte auf den ersten Blick erkennen. Nach den sehr sorgfältigen und umfassenden Untersuchungen, die BÜTSCHLI in seinem großen Werke veröffentlicht hat, und nach den zahlreichen Bestätigungen, die seine Entdeckung durch Forscher wie SCHAUDINN und andere erfahren hat, kann es jetzt keinem Zweifel mehr unterliegen, daß die in Frage stehenden feinen Strukturen des Protoplasmas in Wirklichkeit Schaumstrukturen sind, die darauf beruhen, daß in einer gleichartigen Grundmasse eine ungeheure Menge äußerst feiner, fast an der Grenze der mikroskopischen Wahrnehmbarkeit liegender Vakuolen eingebettet ist, die so dicht aneinander gedrängt sind, daß ihre Wände nur verhältnismäßig dünne Lamellen bilden. BÜTSCHLI hat ferner diese Schaumstruktur des Protoplasmas bei einer so großen Zahl der verschiedensten Zellformen (Fig. 35 a, c, d) nachgewiesen, daß ihre weite Verbreitung jetzt nicht mehr bestritten werden kann.
Nach allen diesen Untersuchungen der neueren Zeit können wir uns jetzt folgendes Bild von dem feineren morphologischen Bau des Protoplasmas machen. Das Protoplasma besteht aus einer in manchen Fällen anscheinend vollständig homogenen, in vielen Fällen aber sehr fein schaumartig oder wabenartig strukturierten Grundmasse, in der eine mehr oder weniger große Menge der verschiedenartigsten geformten Elemente oder Granula eingeschlossen liegt. Bei dem schaumartigen Protoplasma liegen die Granula immer in den Ecken und Kanten, wo die Schaumvakuolen zusammen stoßen, niemals in der Flüssigkeit der Schaumwaben selbst. Schließlich enthält das Protoplasma in seiner Grundmasse in einzelnen Fällen fibrilläre und grob retikuläre Differenzierungen.
Von der Auffassung ALTMANNs, der die Granula allein für die Elementarteile des Protoplasmas, die Zwischensubstanz zwischen den Granulis aber für nicht lebendig hält, haben wir bereits oben[49] gesprochen. Ihre Unhaltbarkeit tritt nach den BÜTSCHLIschen Untersuchungen nur um so augenfälliger hervor.
3. Der Zellkern oder Nucleus.
Der Zellkern ist seit einigen Jahrzehnten ein Lieblingsobjekt morphologischer Untersuchungen geworden, und es hat sich hier eine psychologische Tatsache bemerkbar gemacht, die sich in der Geschichte des menschlichen Geistes immer und immer wiederholt, seitdem der Mensch überhaupt über die Dinge nachzudenken angefangen hat, das ist die Uebertreibung. Die älteren Protoplasmaforscher, besonders MAX SCHULTZE, hatten sich überzeugt, daß das Protoplasma wichtige Lebensäußerungen zeigt, und alsbald hatte sich durch übertriebene Verallgemeinerung die Ansicht herausgebildet, daß das Protoplasma der alleinige Träger aller Lebensvorgänge sei, während der Zellkern eine nebensächliche Bedeutung haben sollte. Seitdem hat man bei gewissen Lebensäußerungen gerade eine hervorragende Beteiligung des Zellkerns erkannt. Eine Reihe von Forschern hat gezeigt, daß der Zellkern bei der Fortpflanzung, Befruchtung, Sekretion etc. eine sehr wichtige Rolle spielt, und sofort ist die ursprüngliche Meinung von der Alleinherrschaft des Protoplasmas in übertriebener Reaktion in das Gegenteil, in die Vorstellung von der Alleinherrschaft des Kerns, umgeschlagen. Wie wir in einem späteren Abschnitt sehen werden, liegt hier, wie so oft, die Wahrheit in der Mitte. Aber jede Reaktion ist übertrieben. Wie ein Pendel gehen die Meinungen zuerst nach beiden Extremen über den Ruhepunkt hinaus, und erst nach einiger Zeit wird die richtige Mitte dauernd eingehalten. Immerhin haben wir es diesen Untersuchungen über den Zellkern zu verdanken, daß sich unsere Kenntnis desselben bedeutend erweitert hat[50].
a) Die Gestalt des Zellkerns.
Was zunächst die Gestalt des Zellkerns betrifft, so ist dieselbe in verschiedenen Zellen sehr verschieden.
Die Bildung des Zellkernbegriffs ging aus von solchen Zellformen, bei denen inmitten einer umgrenzten Protoplasmamasse ein einziger, mehr oder weniger rundlicher Kern gelegen ist, der sich hinsichtlich seines Lichtbrechungsvermögens und seiner Konsistenz wesentlich von dem ihn umgebenden Zellprotoplasma unterscheidet. Später fand man, daß er auch durch sein charakteristisches Verhalten gewissen Reagentien, besonders Farbstoffen, gegenüber in scharfem Gegensatz zum Protoplasma der Zelle steht. Diese Art des Auftretens der Kernmasse in der Zelle ist denn auch die verbreitetste in der ganzen Organismenwelt. Ein großer Teil der freilebenden und die meisten gewebebildenden Zellen im Tier- und Pflanzenreich zeigen diesen Typus. Dabei ist das Verhältnis des Volumens des Kerns zu dem des Zellprotoplasmas ein sehr verschiedenes. Es finden sich Zellen, in denen ein verhältnismäßig kleiner Kern von einer großen Menge von Protoplasma umgeben ist, wie z. B. bei manchen Foraminiferen, während in anderen Zellen die Menge des Zellprotoplasmas gegen die der Kernmasse äußerst gering ist, wie bei den meisten Spermatozoen.
Von dem Typus des mehr oder weniger rundlichen, in der Einzahl vorhandenen Zellkerns finden sich Abweichungen nach den verschiedensten Richtungen hin. Zunächst in bezug auf die Zahl der Kerne. Wie wir bereits oben sahen, gibt es Organismen, die aus einer einheitlichen Protoplasmamasse bestehen, in der eine große Menge von Zellkernen eingebettet liegt, wie das bei den mehrkernigen Zellen und Syncytien der Fall ist. Dabei kann die Zahl der Kerne so groß und ihre Größe so verschwindend klein sein, daß, wie es GRUBER[51] bei gewissen Rhizopoden aus dem Hafen von Genua, speziell bei Pelomyxa pallida, beobachtet hat, die Zellkerne wie ein feiner Staub durch das ganze Protoplasma zerstreut liegen (Fig. 36). Bei solcher Verteilung der Kernmasse, wie sie bei den vielkernigen Formen auftritt, ist die Oberfläche der Kernmasse natürlich erheblich größer als bei der Anordnung derselben Menge zu einem einzigen großen Kern, ein Umstand, der in physiologischer Hinsicht besonders wichtig ist.
Dasselbe Prinzip der Oberflächenvergrößerung kommt aber auch zur Geltung durch Formdifferenzierung des in der Einzahl vorhandenen Kernes. Von der typischen rundlichen Form kommen die mannigfachsten und weitgehendsten Abweichungen vor. Wurstförmige, bandförmige (Fig. 37 a), rosenkranzförmige (Fig. 37 b) Kerne sind namentlich unter den ciliaten Infusorien sehr verbreitet. Noch weiter gehend, führt das Prinzip der Oberflächenvergrößerung zu den sternförmigen und verzweigten Kernen, wie sie z. B. in gewissen Zellen des Insektenkörpers gefunden werden, und wie sie in den geweihförmig verästelten Kernformen der Spinndrüsenzellen vieler Raupen ihre höchste Ausbildung erreichen (Fig. 37 c). Als bemerkenswert erscheint es, daß es gerade die Kerne von sezernierenden, also durch lebhafte Tätigkeit charakterisierten Zellen sind, die besonders das Prinzip der Oberflächenvergrößerung durch Verzweigung zum Ausdruck bringen.
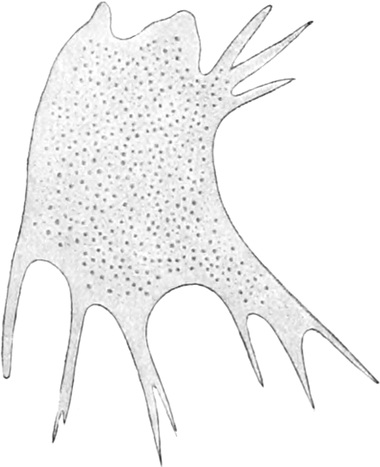
Fig. 36.
Pelomyxa pallida
, eine Rhizopodenzelle aus dem Hafen von Genua mit fein verteilter Kernsubstanz im Protoplasma. Nach G
RUBER
.
b) Die Substanzen des Zellkerns.
Bezüglich der substantiellen Beschaffenheit des Zellkerns gilt genau dasselbe wie für das Protoplasma. Der Zellkern ist ebensowenig wie das Protoplasma eine einheitliche Substanz. Er ist ein morphologisches Gebilde, ein Organoid der Zelle, das aus mehreren verschiedenen Bestandteilen sich aufbaut, aus Bestandteilen, die sich mikroskopisch in manchen Fällen mehr, in anderen Fällen weniger deutlich voneinander unterscheiden lassen, die auch nicht immer sämtlich in allen Zellen vertreten sind. Bei der ungeheuren Kleinheit der Objekte ist es vielfach nicht leicht, die einzelnen Bestandteile scharf zu charakterisieren. Infolgedessen ist die Identität mancher Kernbestandteile einer Zellform mit denen einer anderen Zellform nicht immer über allen Zweifel erhaben, und es bedarf noch ausgedehnter Untersuchungen, bis wir zur völligen Klarheit darüber gelangen, welche Kernbestandteile der einen Zelle den oder jenen Bestandteilen einer anderen genau entsprechen. Immerhin kann man eine Reihe von Kernbestandteilen, die, wie es scheint, eine sehr weite Verbreitung haben, schon jetzt ziemlich gut charakterisieren. Am meisten konstant in den Kernen der verschiedensten Zellen sind folgende Kernsubstanzen zu finden:
1. Der Kernsaft stellt die flüssige Grundsubstanz vor, in der die übrigen geformten Kernbestandteile enthalten sind (Fig. 38).
2. Die achromatische Kernsubstanz bildet in dieser Grundsubstanz ein Gerüstwerk aus feinen Strängen, die dadurch charakterisiert sind, daß sie sich ebensowenig wie der Kernsaft, in dem sie aufgehängt sind, durch die typischen Kernfärbemittel, wie Karminfarbstoffe, Hämatoxylin etc., färben lassen.
3. Die chromatische Kernsubstanz unterscheidet sich von der achromatischen gerade durch ihre Färbbarkeit mit diesen Färbemitteln. Sie ist in der Regel in der Form von kleinen Körnchen und Bröckchen in den Strängen der achromatischen Substanz enthalten und auf ihrer Färbbarkeit beruht zum größten Teil unsere Kenntnis vom feineren Bau des Zellkerns.
4. Das Kernkörperchen (Nucleolus) ist ein homogenes Körnchen, das nur selten in der Mehrzahl im Kern vorhanden ist, und besteht aus einer stark lichtbrechenden Substanz, die mit der chromatischen Substanz nahe verwandt zu sein scheint. Da sich die Substanz der Nukleolen mit den Kernfarbstoffen in der Regel ebenso färbt wie die chromatische Substanz, so ist das Kernkörperchen von manchen Forschern nur als eine besondere Ansammlung von chromatischer Substanz betrachtet worden, eine Ansicht, der indessen das abweichende Verhalten beider Substanzen gewissen chemischen Reagentien gegenüber zu widersprechen scheint.
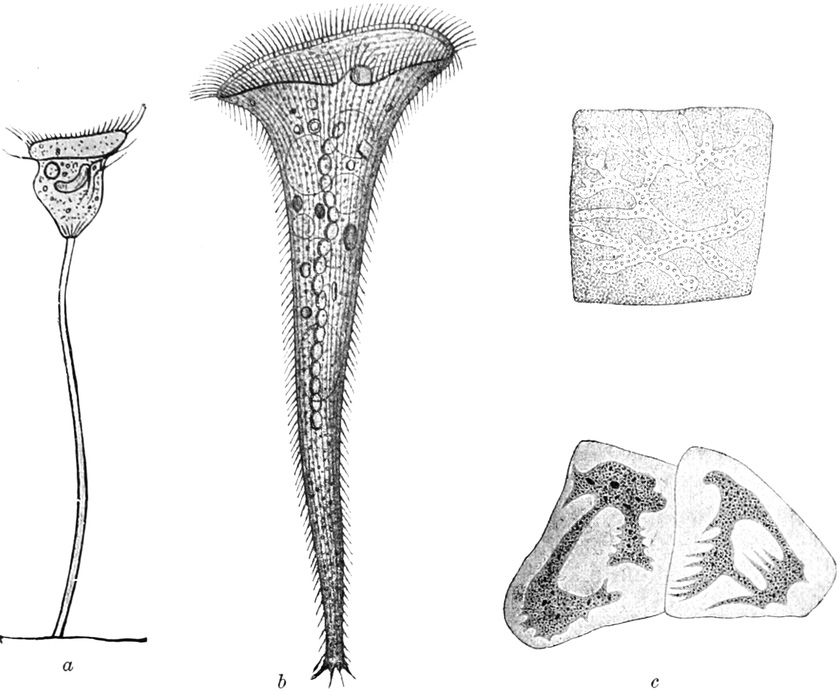
Fig. 37.
Zellen mit verschiedenen Zellkernformen
.
a
Vorticella
, ein Wimperinfusor mit wurstförmigem Zellkern.
b
Stentor
, ein Wimperinfusor mit rosenkranzförmigem Zellkern.
c
Spinndrüsenzellen
von Raupen, mit geweihförmig verzweigtem Zellkern. Nach K
ORSCHELT
.
Alle diese Substanzen, zu denen sich bei weiter fortschreitender Kenntnis des Zellkerns vielleicht noch andere gesellen werden, sind in den verschiedenen Zellen in sehr wechselnder Menge enthalten. Während manche Zellen die eine oder die andere Substanz in größerer Menge in ihrem Zellkern enthalten, tritt dieselbe Substanz in anderen Zellen ganz in den Hintergrund, ja, es scheint sogar, als ob einzelne Substanzen in manchen Zellkernen vollständig fehlen könnten. Umschlossen und vom Protoplasma abgegrenzt sind die Kernsubstanzen in vielen Fällen durch eine besondere Kernmembran, die aber ebensowenig wie die Zellmembran für die Zelle ein allgemeiner Bestandteil des Kerns ist.
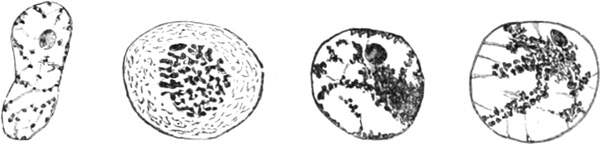
Fig. 38.
Verschiedene Zellkerne
aus Samenmutterzellen vom Pferdespulwurm. Nach H
ERTWIG
.
ZACHARIAS[52] und FRANK SCHWARZ[53] haben vor einiger Zeit die herkömmlichen Namen für die einzelnen Substanzen durch andere Namen zu ersetzen gesucht. So ist die chromatische Substanz als Nuklein, die achromatische als Linin, die Nukleolarsubstanz als Paranuklein oder Pyrenin, der Kernsaft als Paralinin und die Substanz der Kernmembran als Amphipyrenin bezeichnet worden. Es empfiehlt sich indessen durchaus nicht, diese Namen einzubürgern, denn sie führen so leicht zu Verwechslungen mit chemischen Begriffen, daß der Irrtum entstehen könnte, als handle es sich hier um die chemische Charakterisierung der betreffenden Kernelemente, und doch sind die Begriffe der Kernsubstanzen zunächst nur rein morphologische. Wollten wir aber den Begriff Nuklein wirklich in chemischem Sinne anwenden, dann würden wir die chromatische Kernsubstanz dadurch zu den übrigen Kernsubstanzen in einen chemischen Gegensatz bringen, der in Wirklichkeit nicht in dieser Weise existiert, denn die Mehrzahl der übrigen Kernsubstanzen gehört chemisch ebenfalls zu den sogenannten Nukleinen und stellt nur verschiedene Arten derselben vor. Daher ist es zweckentsprechender, die morphologischen Kernbestandteile mit den ursprünglichen, oben verwendeten Namen zu belegen und sie nicht mit chemischen Stoffen begrifflich zu vermischen.
Von Interesse aber ist noch eine Beobachtung bezüglich der Differenzierung der einzelnen Kernsubstanzen. Das ist die Tatsache, daß von den Substanzen, die sich in den meisten Zellen innerhalb des Zellkerns zusammen vorfinden, sich in manchen Zellen auch einzelne zu räumlich im Zellprotoplasma getrennten Massen differenziert haben, so daß zweierlei ganz verschiedene Kernformen in derselben Zelle nebeneinander vorkommen. Dieser Zustand ist fast durchgehends bei den ciliaten Infusorien verwirklicht, die neben einem großen Kern, dem „Makronucleus“, der hauptsächlich aus chromatischer Substanz gebildet wird, noch einen oder mehrere, oft eine größere Anzahl sogenannter Nebenkerne oder „Mikronuklei“ besitzen, die vorwiegend aus chromatischer Substanz bestehen. Die Forderung, die zweierlei Elemente in der Infusorienzelle wirklich als zwei verschiedene Kernsubstanzen aufzufassen, ist in den Vorgängen begründet, die nach den ausgezeichneten Untersuchungen von R. HERTWIG[54] bei der Konjugation zweier Infusorien auftreten. Hier zerfällt der Hauptkern völlig im Protoplasma, und seine neue Anlage differenziert sich nach der Konjugation aus der Substanz der Nebenkerne. Während bei den ciliaten Infusorien der Zustand mit zwei differenten Kernformen im ganzen Leben der dauernde bleibt, wurde bei der Rhizopodenfamilie der Difflugien festgestellt, daß eine räumliche Differenzierung von zweierlei Kernen nur während der Konjugationsperiode auftritt, um nachher wieder dem einkernigen Zustande Platz zu machen[55].
Schließlich sind in neuerer Zeit von R. HERTWIG[56] und seinen Schülern bei verschiedenen Zellformen, namentlich aus dem Reiche der einzelligen Organismen, außerhalb des Zellkerns liegende Massen beschrieben worden, die sich mit Kernfarbstoffen wie Chromatin färben und daher von R. HERTWIG als „Chromidien“ bezeichnet worden sind. Dieser außerhalb des Kerns liegende „Chromidialapparat“ kann sehr verschiedene Formen annehmen. Er kann als dichte Masse den Kern außen umlagern (Fig. 39 a), er kann in Form eines strangförmigen Gerüstes als „Chromidialnetz“ das Protoplasma durchziehen (Fig. 39 b) und er kann schließlich in der Gestalt einzelner isolierter Fäden und Bröckchen im Protoplasma zerstreut sein (Fig. 39 c). Bei bestimmten Lebensvorgängen in der Zelle, beim Wachstum, beim Hunger, vor allem aber bei der Fortpflanzung geht der Chromidialapparat bestimmte Veränderungen ein. So geht z. B. bei der Sporenbildung mancher Rhizopoden der bläschenförmige Zellkern zugrunde und aus einem Teil der Chromidialkörner bildet sich in jeder aus dem Protoplasmazerfall hervorgegangenen Spore ein neuer Zellkern. SCHAUDINN[57] und GOLDSCHMIDT[58] betrachten die Chromidien als gleichwertig mit den Nebenkernen der Infusorien und verallgemeinern die bisher verhältnismäßig wenigen Befunde von Chromidialmassen im Protoplasma zu der allgemeinen Lehre von einem Dualismus der Kernsubstanzen in der Zelle, von denen die eine „vegetative“, die andere „generative“ Funktionen haben soll. R. HERTWIG selbst schließt sich dieser Auffassung indessen nicht an. Für ihn existiert nur ein einheitliches Chromatin in der Zelle und seine Veränderungen sind lediglich die Folgen verschiedenartiger Bedingungen in verschiedenen Zuständen des Zelllebens. Indessen die Untersuchungen über diese Kerndifferenzierungen und ihre physiologische Bedeutung sind noch lange nicht zum Abschluß gelangt und es kann kein Zweifel bestehen, daß der ursprünglich einheitliche Begriff des Zellkerns, je mehr sich diese Untersuchungen vertiefen, um so mehr sich auflösen wird in eine große Vielheit von verschiedenartigen Substanzen, die bei den verschiedenen Zellformen in mannigfaltiger Weise morphologisch und räumlich differenziert sind, und von denen jede in dem Lebensprozeß ihrer spezifischen Zellform eine ganz bestimmte Rolle spielt als ein notwendiges Glied in der gesamten Kette von Wechselbeziehungen zwischen den einzelnen Zellteilen.
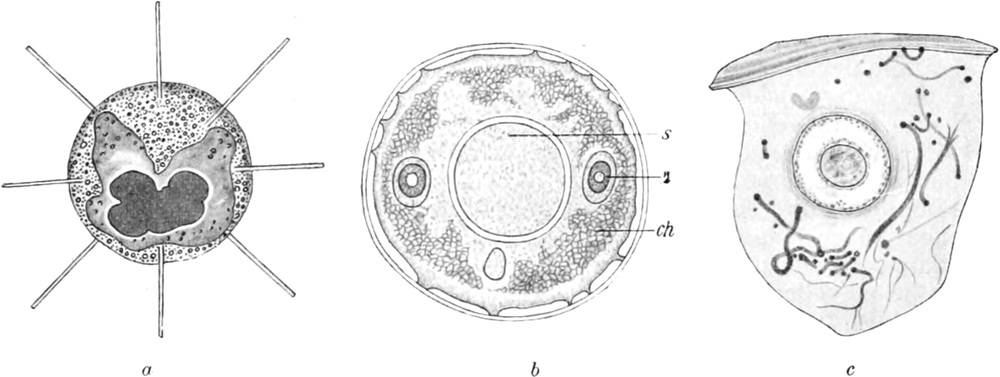
Fig. 39.
a.
Radiolarienzelle
(
Acanthochiasma
). Der Kern ist mit einer mächtigen Rindenschicht von Chromidialmasse umgeben.
b.
Süßwasser-Rhizopodenzelle
(
Arcella vulgaris
). Durch die mit runder Oeffnung (
s
) versehene Schale hindurch sieht man zwei Kerne,
n
, und das Chromidialnetz
ch
im Protoplasma liegen.
c.
Muskelzelle vom Spulwurm
(
Ascaris
). Um den runden Kern mit seinen Kernkörperchen (Nucleolus) liegen dunkel gefärbte Chromidialschleifen und -fäden herum. Den unteren basalen Teil der Zelle bildet die kontraktile Fasermasse.
a
und
b
nach R. H
ERTWIG
,
c
nach G
OLDSCHMIDT
.
c) Die Struktur der Kernsubstanzen.
Werfen wir schließlich noch einen flüchtigen Blick auf die Struktur der Kernsubstanzen, so haben wir bereits gesehen, daß die achromatische Substanz in der Grundmasse des Kernsaftes ein Gerüstwerk bildet, in dessen Strängen und Knotenpunkten die chromatische Substanz und die Kernkörperchen eingebettet liegen in ganz derselben Weise wie die geformten Elemente, die Granula etc. in den Wabenwänden des Protoplasmas. Ja, die Aehnlichkeit des Verhältnisses geht sogar, wie BÜTSCHLI gezeigt hat, in einzelnen Fällen so weit, daß die achromatische Substanz genau dieselbe Wabenstruktur im Zellkern zeigt, wie sie die Grundmasse des Protoplasmas als Regel besitzt (Fig. 40). Sie schließt dann den Kernsaft in den Wabenräumen selbst ein. In anderen Fällen erscheint im Kernsaft eine äußerst feine Granulierung. So hat z. B. KORSCHELT[59] gefunden, daß die Zellkerne von Spinndrüsenzellen der Raupen ganz von gleichmäßig feinen Körnchen (Mikrosomen) erfüllt sind, zwischen denen die chromatische Substanz in Form von dickeren Brocken (Makrosomen) eingelagert erscheint (Fig. 41).
Fig. 40.
Fig. 41.
Fig. 40. Wabenstruktur im Zellkern einer Ganglienzelle. Nach BÜTSCHLI.
Fig. 41. Zwei Zellkerne aus den Spinndrüsenzellen der Raupe von Picris brassicae. Die Grundsubstanz der Kerne zeigt eine feinkörnige Struktur (Mikrosomen). In ihr liegen die Chromatinkörperchen (Makrosomen) eingelagert. Nach KORSCHELT.
Alle diese Strukturen sind aber nur charakteristisch für den sogenannten Ruhezustand der Zelle. Sobald die Zelle sich anschickt, sich durch Teilung zu vermehren, treten ganz eigentümliche und sehr komplizierte Veränderungen in der Struktur der Kernsubstanzen ein, auf die wir erst später in einem anderen Kapitel näher eingehen wollen.
C. Die chemischen Eigenschaften der lebendigen Substanz.
1. Die organischen Elemente.
Wo das Mikroskop seine Grenze findet, beginnt das Reich der Chemie. Die chemische Forschung dringt unter allen Naturwissenschaften am tiefsten in die Zusammensetzung der Körperwelt ein, indem sie vorgeht bis zu den kleinsten Teilen. Bekanntlich ist denn auch die Chemie bis zu dem Punkte gelangt, daß sie die ganze Formenfülle der unermeßlichen Körperwelt als zusammengesetzt erkannt hat aus den Atomen einer verhältnismäßig geringen Zahl einfacher Stoffe der chemischen Elemente. Während man aber früher die Atome der etwa 70 chemischen Elemente als letzte unteilbare Bestandteile der „Materie“ betrachtete, haben sich in den letzten Jahren die Anschauungen der Naturwissenschaft in diesem Punkte ganz wesentlich geändert. Allerdings war man schon lange zu der Ueberzeugung gekommen, daß in Wirklichkeit die Atome der chemischen Elemente keine letzten Einheiten sind in dem Sinne, wie eine frühere Phase der chemischen Forschung sich dachte. MENDELEJEWS Entdeckung des natürlichen Systems der Elemente wies schon darauf hin, daß eine auf direkter Abstammung voneinander beruhende natürliche Verwandtschaft unter den chemischen Elementen bestehe. Allein erst die rapide sich folgenden Entdeckungen der letzten Jahre über die radioaktiven Stoffe haben uns mit der Tatsache des Atomzerfalls bekannt gemacht und haben dadurch eine Reihe von althergebrachten Anschauungen teils ganz über den Haufen geworfen, teils heftig erschüttert[60]. Wir wissen jetzt wenigstens von einer Anzahl von Elementen, daß sie in andere Elemente zerfallen können und langsam von selbst zerfallen. So geht das Radium aus dem Zerfall des Urans hervor und der Zerfall des Radiums wiederum liefert Helium, Polonium und Blei. Die Vorstellung der mittelalterlichen Alchymisten von der Umwandlung der Metalle, die so lange der modernen Chemie zum Gespött dienten, haben dadurch eine tatsächliche Basis erhalten. Ja, wir kennen in den negativen Elektronen heute körperliche Teilchen, die noch 2000mal leichter sind als die Atome des leichtesten Elementes, des Wasserstoffs. So hat die moderne Forschung die Welt der chemischen Elementatome, in deren Grenzen bisher alles chemische Denken eingeschlossen war, um unermeßliche Strecken überschritten. Indessen berühren alle diese Dinge, die eben erst in den Gesichtskreis wissenschaftlicher Erkenntnis eintreten, die physiologischen Probleme vorläufig noch nicht, denn die Physiologie hat noch nicht einmal Zeit gehabt, die Frage aufzuwerfen, ob und wie weit die Vorgänge des Elementzerfalls am Lebensvorgang beteiligt sind. Es ist aber ganz zweifellos, daß die neuen Entdeckungen der Chemie und Physik auch auf unsere Vorstellungen vom Lebensvorgang sehr bald einen Einfluß ausüben werden.
Beschränken wir uns vorläufig auf die Welt der chemischen Elementatome, so zeigt uns eine chemische Elementaranalyse der lebendigen Substanz, daß von den etwa 70 Elementen, aus deren Zusammensetzung sich die gesamte Körperwelt aufbaut, nur die geringe Zahl von 12 Elementen konstant in der lebendigen Substanz zu finden ist. Die 12 Elemente, die in jeder Zelle angetroffen werden, sind:
Name: Zeichen: Atomgewicht:
Kohlenstoff C 12
Stickstoff N 14
Schwefel S 32
Wasserstoff H 1
Sauerstoff O 16
Phosphor P 31
Chlor Cl 35
Kalium K 39
Natrium Na 23
Magnesium Mg 24
Calcium Ca 40
Eisen Fe 56
Neben diesen 12 allgemeinen organischen Elementen kommt noch eine kleine Anzahl spezieller Elemente vor, die nicht in allen Zellen anzutreffen sind und zum Teil nur ganz sporadisch gefunden werden. Es sind das:
Name: Zeichen: Atomgewicht:
Silicium Si 28
Fluor F 19
Brom Br 80
Jod J 127
Aluminium Al 27
Mangan Mn 55
Unter ihnen tritt das Silicium weit, das Fluor wenig verbreitet auf, während die anderen, die ebenfalls nur ein sehr beschränktes Vorkommen haben, nebst einigen Metallen, die bisweilen spurweise in der lebendigen Substanz gefunden werden, wie das Kupfer, vielleicht gar keine Bedeutung für den Lebensvorgang der betreffenden Organismen besitzen, in denen sie beobachtet worden sind.
Aber keins von diesen gesamten organischen Elementen ist ausschließlich auf die organische Natur beschränkt.
Der Kohlenstoff findet sich, an Sauerstoff gebunden, als Kohlensäure in der Luft und massenhaft im kohlensauren Kalk der Sedimentgesteine.
Der Wasserstoff bedeckt, ebenfalls an Sauerstoff gebunden, als Wasser den größten Teil der Erdoberfläche.
Der Sauerstoff ist sowohl frei als Gas in der atmosphärischen Luft vorhanden, die er zu ca. 21 Proz., zusammensetzt, als auch gebunden an eine große Zahl anderer Elemente.
Der Stickstoff kommt gleichfalls sowohl im freien Zustande vor in der Luft zu ca. 79 Proz. als auch gebunden an Wasserstoff und Sauerstoff in den Verbindungen des Ammoniaks sowie der salpetrigen und Salpetersäure.
Der Schwefel ist weit verbreitet in Verbindung mit Sauerstoff in schwefelsauren Salzen.
Der Phosphor verhält sich ebenso und ist in den phosphorsauren Salzen der Alkalien und alkalischen Erden überall zu finden.
Das Chlor erscheint in ungeheurer Verbreitung, an Natrium gebunden, als Kochsalz.
Das Kalium kommt, an Chlor gebunden, als Chlorkalium und in Verbindung mit Säuren in Form von salpetersauren, schwefelsauren, phosphorsauren Salzen vor.
Das Natrium erscheint hauptsächlich im Chlornatrium oder Kochsalz überall auf der Erdoberfläche, gelöst im Meere sowohl wie in der Erde und als große feste Massen in Salzlagern.
Das Magnesium ist ein beständiger Begleiter des Kaliums und Natriums und tritt in denselben Verbindungen auf wie diese, als Chlormagnesium, kohlensaure, schwefelsaure und phosphorsaure Magnesia.
Das Calcium setzt in Form von kohlensaurem, kieselsaurem, schwefelsaurem, phosphorsaurem Kalk die ungeheuren Kalksteinschichten der Sedimentgebirge zusammen.
Das Eisen ist in Form von Schwefelverbindungen sowie Oxyden und deren Salzen ungemein weit auf der Erdoberfläche verbreitet.
Das Silicium erscheint fast ausschließlich an Sauerstoff gebunden in Form von Kieselsäure und deren Salzen in den Gesteinen der plutonischen Gebirgsmassen.
Das Fluor findet sich hauptsächlich in Verbindung mit Calcium als Flußspat.
Das Brom und Jod ist als Brom-(Jod-)Natrium und Brom-(Jod-)Kalium in vielen Salzlagern sowie im Meerwasser vorhanden.
Das Aluminium ist in seiner Verbindung mit Sauerstoff zu Tonerde und diese in Verbindung mit Kieselsäure zu Feldspat ein über die ganze Erde verbreitetes Element.
Das Mangan schließlich, sowie alle anderen Metalle, die gelegentlich noch hier und dort im lebendigen Organismus beobachtet werden, sind in Form ihrer Oxyde, Schwefelverbindungen und der verschiedensten Salze in den Gesteinen der Gebirge überall anzutreffen.
Dieser Ueberblick zeigt uns schon, daß alle organischen Elemente zugleich die anorganische Körperwelt unserer Erdoberfläche zusammensetzen helfen. Da aber ferner die chemische Elementaranalyse der lebendigen Substanz zu dem Ergebnis geführt hat, daß außer diesen Elementen keine anderen im Organismus zu finden sind, so ergibt sich, daß ebensowenig ein besonderes Lebenselement in den Organismen existiert wie eine besondere Lebenskraft. Die Begriffe des „Lebensäthers“, des „spiritus animalis“, der „Lebensmaterie“ etc., mit denen die ältere Physiologie so freigebig umging, sind daher aus der heutigen Lehre vom Leben entsprechend der fortgeschrittenen Entwicklung, welche die analytische Chemie in unserer Zeit durchgemacht hat, vollständig verschwunden, und man weiß, daß die lebendige Substanz aus keinen anderen elementaren Stoffen zusammengesetzt ist, als die Welt der leblosen Körper.
2. Die chemischen Verbindungen der Zelle.
Um den chemischen Aufbau der lebendigen Substanz kennen zu lernen, müssen wir die lebendige Substanz töten. So paradox das klingen mag, dennoch ist es vorläufig der einzige Weg, auf dem wir zu einer Kenntnis von dem Chemismus der lebendigen Substanz gelangen können, und wir müssen uns den beißenden Spott, den MEPHISTOPHELES vor dem Schüler über diese Praxis der physiologischen Chemie ausgießt, noch immer ruhig gefallen lassen. In der Tat ist es nicht möglich, der lebendigen Substanz mit den Methoden der Chemie nahezutreten, ohne dieselbe zu töten. Jedes chemische Reagens, das mit ihr in Berührung kommt, zerstört oder verändert sie, und was wir dann chemisch untersuchen, ist keine lebendige Substanz mehr, sondern eine Leiche, eine Substanz, die völlig andere Eigenschaften hat. Wir können daher nur durch Rückschlüsse aus den chemischen Befunden am Leichnam auf die Verhältnisse am lebendigen Objekt zu Vorstellungen über die Chemie des letzteren gelangen, durch Schlüsse, deren Richtigkeit wir nur in seltenen Fällen experimentell am lebendigen Objekt nachzuprüfen in der Lage sind. Daß bei dieser Sachlage die größte Vorsicht in bezug auf die Uebertragung der Ergebnisse vom toten Objekt auf die Verhältnisse des lebendigen nötig ist, liegt auf der Hand, und wir müssen uns jeden Augenblick bewußt bleiben, daß die chemischen Verhältnisse am lebendigen Objekt scharf von denen seines Leichnams zu unterscheiden sind.
Haben wir uns einerseits überzeugt, daß zwischen den Elementarstoffen, welche die lebendige Substanz zusammensetzen, und denen, aus welchen sich die leblose Körperwelt aufbaut, kein prinzipieller Unterschied existiert, so finden wir doch anderseits, daß ein Teil der Elemente in der lebendigen Substanz zu ganz eigentümlichen Verbindungen zusammentritt, die nur die lebendige Substanz charakterisieren und die, soweit sie nicht vom Menschen künstlich hergestellt werden konnten, in der leblosen Natur nirgends zu finden sind. So haben wir in der lebendigen Substanz neben chemischen Verbindungen, die auch in der leblosen Natur vorkommen, spezifisch organische Atomkomplexe.
Ein großer Teil dieser organischen Verbindungen und unter ihnen gerade die, welche für die lebendige Substanz von hervorragender Bedeutung sind, besitzt eine so komplizierte Konstitution, daß es der Chemie bisher noch nicht gelungen ist, einen Einblick in die räumlichen Lageverhältnisse der Atome in ihren Molekülen, d. h. in ihren letzten Teilchen, die noch die Eigenschaft des ganzen Stoffes besitzen, zu gewinnen, wenn auch vielfach bereits ermittelt werden konnte, wieviel Atome jedes Elements im Molekül des Stoffes enthalten sind.