Sechstes Kapitel. Vom Mechanismus des Lebens. (continued 2)
Reading edition
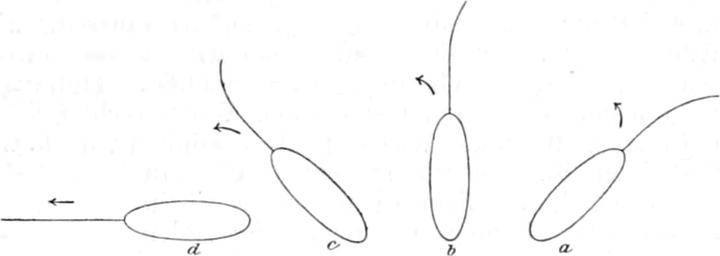
Fig. 271.
Schema der Achseneinstellung einer Geißelinfusorienzelle bei kontraktorischer Erregung von rechts her
. Die Seite, nach welcher die Konkavität der Geißel gerichtet ist, ist die kontraktorisch erregte. Die Pfeile bezeichnen die Drehungsrichtung.
Hiernach ist es sehr leicht, sich die Verhältnisse der Achsenrichtung auch bei zweigeißeligen Formen schematisch zu konstruieren, wie wir sie z. B. in dem Geißelinfusor Polytoma (Fig. 272) vor uns haben. Befinden sich zwei Geißeln am Vorderende der Zelle, so entspricht die Zelle einem Boote, das am Vorderende mit zwei Rudern bewegt wird. Ist der Schlag beider Ruder gleich stark, so bewegt sich das Boot geradeaus. Dasselbe muß auch bei der Geißelzelle der Fall sein. Schlägt dagegen das eine Ruder stärker, so dreht sich das Boot mit dem Vorderende nach der entgegengesetzten Seite. Das gleiche wird also bei der zweigeißeligen Flimmerzelle eintreten, wenn von einer Seite her ein kontraktorischer Reiz einwirkt, der die eine Geißel zu stärkerem Schlagen veranlaßt (Fig. 272 a b c). Das Vorderende der Geißelzelle muß sich dann von der Reizquelle wegdrehen, bis die Längsachse in der Richtung des einfallenden Reizes mit dem Vorderende von der Reizquelle abgewendet ist. In dieser Richtung werden beide Geißeln gleich stark kontraktorisch erregt (Fig. 272 d), und das Flagellat schwimmt infolgedessen gerade von der Reizquelle fort. So entsteht auch bei den zweigeißeligen Formen negative Chemotaxis etc. durch einseitige kontraktorische Erregung.
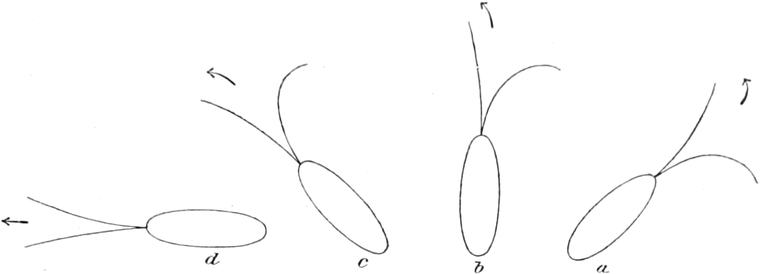
Fig. 272.
Schema der Achseneinstellung einer Infusorienzelle mit zwei Geißeln bei kontraktorischer Erregung von rechts her
. Die stärkere Konkavität der einen Geißel deutet die stärkere kontraktorische Erregung an. Die Pfeile bezeichnen die Drehungsrichtung.
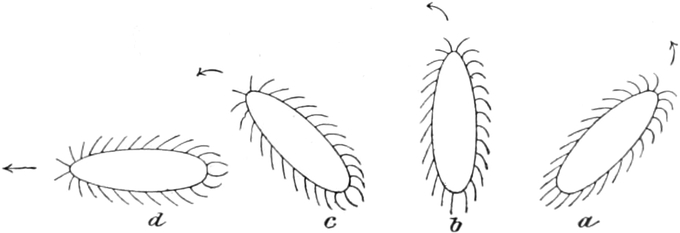
Fig. 273.
Schema der Achseneinstellung eines Wimperinfusoriums bei kontraktorischer Erregung von rechts her
. Die stärkere Konkavität der Wimpern nach hinten deutet die stärkere kontraktorische Erregung an. Die Pfeile bezeichnen die Richtung der Drehung und befinden sich am vorderen Körperpol.
Was sich bei Polytoma und anderen Formen aus der Tätigkeit zweier Geißeln ergibt, das kann bei den Wimperinfusorien schließlich als Folge des Schlages zahlreicher Wimpern aufgefaßt werden. Hier haben wir z. B. in den Bewegungen von Paramaecium das Analogon zu den Bewegungen eines langen, vielruderigen Bootes. Schlagen alle Ruder auf beiden Seiten vollkommen gleich stark, so schwimmt das Boot geradeaus; schlagen die Ruder auf einer Seite stärker, so dreht sich das Boot nach der entgegengesetzten Seite. Dasselbe gilt von der Wimperbewegung beim Paramaecium. Schlagen die Wimpern auf beiden Seiten gleich stark, so schwimmt das Infusor in gerader Richtung vorwärts; wirkt dagegen von einer Seite her ein kontraktorisch erregender Reiz, so daß die Wimpern auf der einen Seite des Körpers zu stärkerem Schlagen veranlaßt werden, als auf der anderen (Fig. 273 a), so muß sich der Körper so lange von der Reizquelle mit dem Vorderende abwenden, bis er mit seiner Längsachse in der Richtung des einfallenden Reizes eingestellt ist. Dann erst werden die Wimpern an korrespondierenden Punkten der beiden Körperlängsseiten gleich stark erregt, und die Zelle schwimmt in gerader Richtung von der Reizquelle fort. So ergibt sich schließlich auch bei Wimperinfusorien negative Chemo-, Baro-, Thermo-, Phototaxis aus einseitiger kontraktorischer Erregung.
Ebenso einfach ist die Kontraktion des Mechanismus der Achseneinstellung bei der positiven Chemo-, Thermo-, Phototaxis etc. der Flimmerzellen. Die Achseneinstellung bei diesen Reizwirkungen kann z. B. hervorgerufen werden durch eine einseitige expansorische Erregung. Denken wir uns, daß ein Reiz von einer Seite her expansorisch erregend wirkt, so wird die Expansionsphase des Wimperschlages, d. h. die Rückkehr der Geißeln oder Wimpern in die Ruhelage, auf dieser Seite energischer erfolgen als auf der gegenüberliegenden Seite des Körpers. Die Folge davon wird die umgekehrte sein, als wenn die Kontraktionsphase energischer wird, d. h. das Vorderende des Körpers wird sich nach der Seite des einfallenden Reizes hinwenden, bis die Längsachse in der Richtung des Reizes eingestellt ist. Es hängt dann allein von der relativen Größe der Kontraktions- und Expansionsphase der Wimpern ab, ob der motorische Effekt so gerichtet ist, daß die Zelle in dieser Achseneinstellung sich auf die Reizquelle zu oder rückwärts von ihr fortbewegt. Diese Achseneinstellung aber muß immer eintreten, mag sich die Zelle durch eine, zwei oder viele Flimmerhaare bewegen (Fig. 274).
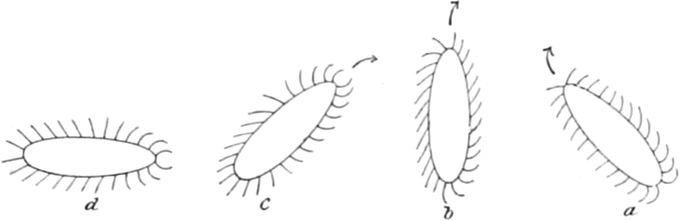
Fig. 274.
Schema der Achseneinstellung eines Wimperinfusoriums bei expansorischer Erregung von rechts her
. Die Pfeile befinden sich am vorderen Körperpol und geben die Drehungsrichtung an. Die stärkere Konkavität der Wimpern nach vorn deutet die expansorische Erregung an.
Wirkt schließlich von einer Seite her ein kontraktorisch erregender, von der andern ein expansorisch erregender Reiz auf die Infusorienzelle ein, so liegt es auf der Hand, daß beide bezüglich der Achseneinstellung des Körpers in gleichem Sinne wirken müssen, d. h. so, daß der Körper sich mit dem Vorderteil nach der Seite des expansorischen Reizes einstellt. Ob in dieser Achseneinstellung eine Bewegung in der einen oder in der anderen Richtung oder gar ein Stillstand am Ort stattfindet, das hängt dann ganz von der Größe und Richtung des motorischen Effekts ab, den der Wimperschlag an beiden entgegengesetzten Körperenden hat. Daß alle drei Möglichkeiten realisiert sind, zeigt am schönsten die Galvanotaxis, wo man je nach der Intensität des galvanischen Stromes Vorwärtsschwimmen, Stillstand am Orte oder endlich Rückwärtsgehen erzielen kann.
Auch der Mechanismus der Achseneinstellung bei kontraktorischer und expansorischer Lähmung auf einer Seite des Körpers ist nach den vorstehenden Betrachtungen schematisch leicht zu konstruieren, denn es liegt auch hier eine Differenz in der Tätigkeit der Bewegungsorganoide auf beiden Seiten des Körpers vor, die nach den bekannten Prinzipien eine Achsendrehung herbeiführen muß, bis die Differenz auf beiden Seiten der Längsachse ausgeglichen ist.
Veranschaulichen wir uns an unserem ersten Schema, von dem wir ausgingen, die verschiedenen durch kontraktorische oder expansorische Erregung oder Lähmung des einen Körperpols veranlaßten Achseneinstellungen eines vorübergehend oder dauernd polar differenzierten Zellkörpers, so bekommen wir folgende Fälle, wobei die Pfeilspitze die Lage des vorderen Körperendes bezeichnet:
←c c + ne e e ec c + n→
c c − ne e→ ←e ec c − n
In Worten heißt das: Bei kontraktorischer Erregung oder expansorischer Lähmung von einer Seite her wendet sich der vordere Körperpol von der Reizquelle ab; bei kontraktorischer Lähmung oder expansorischer Erregung von einer Seite her wendet sich der vordere Körperpol der Reizquelle zu.
Wir dürfen indes nicht vergessen, daß es sich hier zunächst nur um konstruierte Schemata handelt.
Diese theoretisch konstruierten Schemata des Mechanismus der Achseneinstellung sind aber sicherlich nicht überall in dieser einfachen Form realisiert. Sie gelten allerdings zweifellos für alle nackten Rhizopoden und Leukocyten, sonst aber bei Infusorienzellen vielleicht nur in solchen Fällen, in denen ein sehr gleichmäßiger und allmählicher Abfall in der Intensität des Reizes vorhanden ist. Sicher ist, daß das Schema bei Geißel- und Wimperinfusorien überall da, wo eine starke Intensitätsdifferenz, ein plötzlicher Intensitätsabfall des Reizes, also eine annähernd punktförmige Reizung besteht, infolge der speziellen Differenzierung des Wimperapparates durch bestimmte Wimperreflexe eine wesentliche Abänderung erfährt. So hat namentlich JENNINGS[629] in den letzten Jahren für verschiedene Infusorienformen den Nachweis geführt, daß jede Form auf gewisse einseitig einwirkende Reize mit einem ganz bestimmten Wimperreflex antwortet, der eine Bewegung zur Folge hat, die den Zellkörper von der Reizquelle abwendet. Derartige spezielle Zellreflexe sind namentlich für die mit verschiedenartig differenzierten Wimpern versehenen Infusorien oft in sehr komplizierter Weise entwickelt, aber doch so, daß jede Infusorienform meist nur über einen einzigen, ganz bestimmten Reflexmechanismus verfügt, der die Achseneinstellung des Körpers beherrscht. So hat JENNINGS z. B. den Wimperreflex und seine Folgen bezüglich der Bewegungsrichtung bei Paramaecium genau analysiert. Schwimmt ein Paramaecium z. B. auf seinem Wege mit dem vorderen Körperende gegen einen festen Körper (Fig. 275 A), so tritt zunächst im gleichen Moment eine Aenderung des Wimperschlages in der Weise ein, daß die Wimpern stärker nach vorn als nach rückwärts schlagen, so daß das Infusorium eine Strecke weit rückwärts schwimmt. Bald darauf aber kehrt die ursprüngliche Richtung des Wimperschlages wieder zurück, aber so, daß der Wimperschlag auf einer Seite des Körpers heftiger ist als auf der anderen. Die Folge ist, daß das Infusorium seine Schwimmrichtung ändert, so daß es jetzt in einem bestimmten Winkel von seiner alten Schwimmrichtung abweichend von neuem vorwärts schwimmt. Stößt es auf dieser Bahn von neuem an ein Hindernis, so wiederholt sich der Reflex. In Fig. 275 sind die einzelnen Phasen dieses Wimperreflexes in den Stadien 1–6 zum Ausdruck gebracht. In ganz analoger Weise verhält sich nun Paramaecium bei der Chemotaxis. Kommt ein Individuum auf seiner Schwimmbahn in einen Tropfen von ganz verdünnter Säure, die eine positiv chemotaktische Wirkung ausübt[630], so schwimmt es vorwärts bis gegen die Grenze des Tropfens. Hier wirkt das umgebende Medium negativ chemotaktisch, und zwar so, daß es als Reiz den oben genannten Reflexmechanismus auslöst, der dem Infusorium eine andere Schwimmrichtung gibt. Kommt es im Verfolg dieser neuen Schwimmrichtung von neuem an die Grenze des Tropfens, so wiederholt sich der Vorgang immer wieder von neuem, so daß das Infusor, wie Fig. 276 I zeigt, niemals aus dem Tropfen herauskommt. Einen ganz analogen Reflexmechanismus hat JENNINGS bei freischwimmenden Stentoren beobachtet, die negativ phototaktisch sind. Kommen sie auf ihrer Schwimmbahn aus der Dunkelheit an die Grenze des Lichtes, so ändert sich sofort durch einen ganz bestimmten Reflex des Wimperschlages, den der Lichtreiz auslöst, ihre Schwimmrichtung, wie es Fig. 276 II in den aufeinanderfolgenden Stadien 1–4 bei einem Individuum erkennen läßt. Auf diese Weise kommen die Stentoren niemals dazu, die Lichtgrenze zu überschreiten. Für Opalina und Spirostomum hat kürzlich WALLENGREN[631], wie bereits oben[632] erwähnt, diese Reaktionsmechanismen in der eingehendsten Weise analysiert und damit die Mechanik der verschiedenartigen Achseneinstellungen, die an ihnen unter verschiedenen Bedingungen eintreten, speziell bei galvanischer Reizung vollständig aufgeklärt.
Ob sich die Zelle in der durch den Reiz erzeugten Achseneinstellung vorwärts oder rückwärts bewegt oder stillsteht, hängt im gegebenen Falle von dem Intensitätsverhältnis der Kontraktions- zu der Expansionsphase des Wimperschlages an der ganzen Zelle ab.
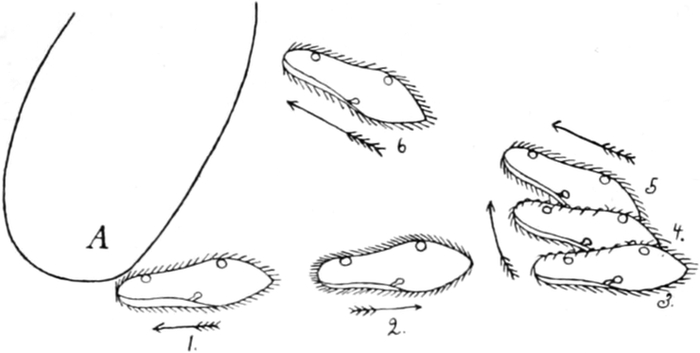
Fig. 275. Wimperreflex eines Paramaeciums beim Anstoßen an einen festen Körper
A
in sechs aufeinanderfolgenden Stadien. Nach J
ENNINGS
.
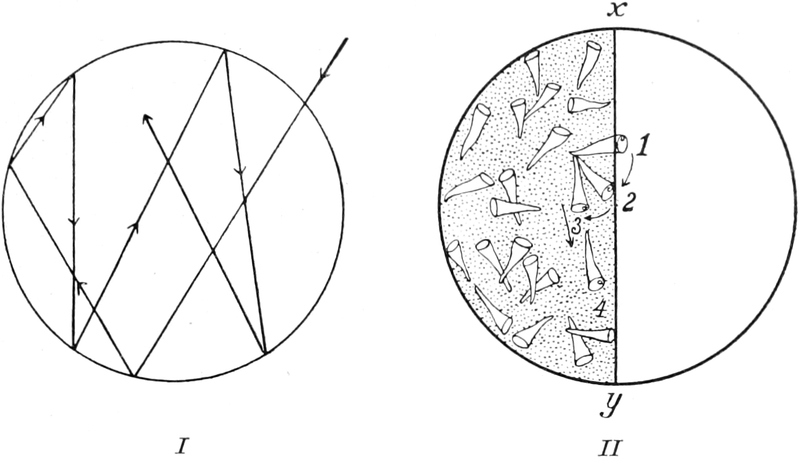
Fig. 276.
I
Negative Chemotaxis von Paramaecium
. Schwimmbahn eines einzelnen Paramaeciums in einem Tropfen schwacher Säurelösung, zu der es positiv chemotaktisch ist.
II
Negative Phototaxis von Stentor
. Reaktion eines Individuums bei Berührung der Grenze von Dunkel zu Hell in vier aufeinanderfolgenden Stadien. Nach J
ENNINGS
.
So ergeben sich die interessanten und im gesamten organischen Leben so überaus wichtigen Tatsachen der positiven und negativen Chemotaxis, Barotaxis, Thermotaxis, Phototaxis und Galvanotaxis mit mechanischer Notwendigkeit als einfache Folgen aus den Differenzen im Biotonus, die an verschiedenen Oberflächenbezirken der freilebenden Zelle durch Einwirkung von Reizen hervorgerufen werden.
** *
Indem wir den Kernpunkt des Stoffwechsels in dem fortwährenden Aufbau und Zerfall gewisser hypothetischer Verbindungen von sehr labiler Konstitution erblickten, die wir, obwohl sie sich chemisch bisher nur ungenügend charakterisieren ließen, wegen ihrer hohen Bedeutung für das Leben kurz als Biogene bezeichneten, haben wir den Lebensvorgang selbst in einer schematisch einfachen Form definiert: Der Lebensvorgang ist die Summe aller derjenigen Prozesse, die mit dem Aufbau und Zerfall der Biogenmoleküle verknüpft sind.
Das in die lebendige Substanz von außen her eintretende tote Nahrungsmaterial wird durch komplizierte Umsetzungen in der lebendigen Substanz fortwährend selbst zu lebendiger Substanz formiert, aber die lebendige Substanz stirbt auch fortwährend und wird wieder als tote Masse von der überlebenden Substanz ausgeschieden. So besteht das Leben aus einem ewigen Lebendigwerden und Sterben, das ununterbrochen und nebeneinander in jedem Augenblick in aller lebendigen Substanz sich abspielt.
Die Gesamtheit aller Prozesse, die zum Aufbau lebendiger Substanz führen, bildet die Assimilationsphase, die Gesamtheit der mit dem Zerfall der lebendigen Substanz verknüpften Prozesse die Dissimilationsphase des Stoffwechsels. Assimilation und Dissimilation sind die Grundlage alles Lebens. Ihr Verhältnis zueinander, das wir als Biotonus bezeichneten, beherrscht die Lebensäußerungen. Vom Beginn der Entwicklung bis zum Tode ändert sich der Biotonus ununterbrochen von selbst, indem einzelne Glieder der Assimilations- oder Dissimilationsreihe andere Werte annehmen, und damit ändern sich die Lebensäußerungen im einzelnen ebenfalls. Darin besteht die Entwicklung. Desgleichen ändert sich der Biotonus, wenn Reize auf die lebendige Substanz einwirken, und dementsprechend verändern sich auch die Lebensäußerungen unter dem Einfluß der Reize. So sind die Lebensäußerungen bestimmt durch die einzelnen Glieder der langen Stoffwechselkette, die zusammen den eigentlichen Lebensvorgang bilden.
II. Die Mechanik des Zelllebens.
Wenn wir den Stoffwechsel als den elementaren Lebensvorgang betrachten, entsteht nunmehr die Aufgabe, die Lebensäußerungen, die wir als Ausdruck des Lebensvorgangs auffassen müssen, mechanisch aus dem Stoffwechsel abzuleiten.
Wir haben gesehen, daß alle lebendige Substanz, die jetzt die Erdoberfläche bewohnt, die Form von Zellen besitzt, daß also die Zelle der eigentliche Sitz des Lebensvorgangs ist. In der Zelle finden wir zugleich die allgemeinen Lebensäußerungen in ihrer elementaren Form. Eine mechanische Analyse der Lebensäußerungen muß daher, wenn sie nicht auf halbem Wege stehen bleiben will, die Zelle selbst zu ihrem Untersuchungsobjekt machen. Dabei harrt zuerst die Frage, wie sich der Stoffwechsel der lebendigen Substanz, den wir uns bisher nur schematisch an einem gleichförmigen Substrat vorgestellt haben, in der Zelle mit den charakteristischen Differenzierungen ihres Inhalts gestaltet, ihrer Beantwortung, ehe wir daran denken können, die verschiedenen Lebensäußerungen der Zelle mechanisch aus ihrem Stoffwechsel abzuleiten. Sind wir auch bei unseren sehr geringen Kenntnissen der einzelnen chemischen Prozesse in der Zelle noch immer weit entfernt davon, uns ein detailliertes Bild von dem feineren Stoffwechselgetriebe in der Zelle zu machen, so haben uns doch die Untersuchungen der letzten zehn Jahre genügend Material geliefert, um eine Vorstellung von den allgemeinen Verhältnissen des Stoffwechsels in der Zelle zu gewinnen. Vor allen Dingen haben uns die Untersuchungen der letzten beiden Jahrzehnte mit einer großen Anzahl von Tatsachen bekannt gemacht, die uns über die viel erörterte Bedeutung der beiden wesentlichen Zellbestandteile, des Kerns und Protoplasmas, sowie über die Art ihrer Beziehung zueinander manchen Aufschluß verschaffen.
A. Die Rolle des Kerns und Protoplasmas im Leben der Zelle.
1. Die Theorie von der Alleinherrschaft des Kerns in der Zelle.
Die klassischen Untersuchungen der älteren Protoplasmaforscher, unter denen nur DUJARDIN und MAX SCHULTZE genannt seien, waren darauf gerichtet, das Protoplasma als Träger aller Lebenstätigkeiten hinzustellen. Mit dem Zellkern wußte man in der älteren Zellenlehre nichts anzufangen, denn da man alle wahrnehmbaren Lebensäußerungen sich am Protoplasma abspielen sah, hielt man den Kern für unwesentlich und beschäftigte sich nicht weiter mit ihm.
Es ist psychologisch interessant und ein charakteristischer Vorgang in der Geschichte des menschlichen Denkens, daß die Erkenntnis häufig erst nach beiden Seiten um den Mittelpunkt der Wahrheit herum pendelt, ehe sie an demselben stehen bleibt. Eine extreme Anschauung, die sich im Laufe der Zeit als unhaltbar herausstellt, führt einen Umschlag in das gegenteilige Extrem herbei, und erst allmählich wird durch eine gesunde Reaktion die wahre Mitte gefunden. So geschah es in der Zellenlehre. Die ursprüngliche Vorstellung von der alleinherrschenden Rolle des Protoplasmas in der Zelle schlug in neuerer Zeit, nachdem man gefunden hatte, daß der Kern besonders bei der Fortpflanzung der Zelle durch Teilung und bei der Befruchtung des Eies tiefgreifende Veränderungen erfährt, während das Protoplasma scheinbar ruhig bleibt, in die gegenteilige Vorstellung von der Alleinherrschaft des Kerns um, d. h. in die Vorstellung, daß der Kern den wesentlichen Träger des Zelllebens vorstelle, während das Protoplasma nur eine accessorische Rolle im Zellleben spiele. Was man in der älteren Zelllehre ausschließlich dem Protoplasma zuschrieb, das wies man in der neueren Zelllehre allein dem Zellkern zu, und erst seit dem letzten Jahrzehnt beginnt sich eine gesunde Reaktion gegen diesen Umschlag in das andere Extrem geltend zu machen.
Es ist nicht möglich, auf alle einzelnen Tatsachen einzugehen, die in neuerer Zeit bezüglich der Rolle des Zellkerns und Protoplasmas zusammengetragen worden sind. Es wird genügen, wenn wir einige der wichtigeren Beobachtungen und Versuche anführen, die zu bemerkenswerten Schlußfolgerungen Anlaß gegeben haben.
Die Vorstellung, daß der Zellkern eine Alleinherrscherrolle in der Zelle spiele, hat in neuerer Zeit eine ziemlich weite Verbreitung gewonnen und ist in verschiedener Form zum Ausdruck gekommen. Vor allem ist im Hinblick auf die überraschend komplizierten und regelmäßigen Veränderungen, welche die neuere Morphologie bei den Vorgängen der Befruchtung und Teilung der Eizelle am Zellkern nachgewiesen hat, die von hervorragenden Forschern, wie WEISMANN, HERTWIG, BOVERI u. a. vertretene Ansicht entstanden, daß der Zellkern der Träger der „Vererbungsstoffe“ sei, und daß die Vererbung nur durch die Uebertragung gewisser Stoffe des Zellkerns auf die Nachkommen erfolge, während das Protoplasma keine für die Vererbung nötigen Stoffe enthalte.
Die Tatsache, daß bei der Befruchtung der Eizelle durch die Samenzelle nur eine verschwindend geringe Protoplasmamenge von seiten der letzteren auf die Nachkommen übertragen wird, da das Spermatozoon zum überwiegenden Teil aus Kernmasse besteht, hat dazu verführt, diese geringe Protoplasmamenge des Spermatozoons vollständig zu vernachlässigen und damit die Uebertragung der väterlichen Eigenschaften auf die Nachkommen allein dem Kern des Spermatozoons zuzuschreiben. Das war um so naheliegender, als die geringe Protoplasmamasse des Spermatozoons, die hauptsächlich in der Geißel enthalten ist, nach dem Eindringen desselben in die Eizelle sich nicht mehr weiter vom Protoplasma der letzteren unterscheiden läßt, während die charakteristischen und tiefgehenden Veränderungen, die durch die Befruchtung bedingt werden, allein am Kern optisch wahrnehmbar sind. Indessen, kritischeren Köpfen war die Hinfälligkeit der Argumente, auf die sich die Alleinherrschaftstheorie des Kerns bei der Vererbung stützte, peinlich, und so suchten sie nach unzweideutigen Beweisen für dieselbe.
Die fundamentale Tatsache, die NUSSBAUM[633] an Infusorien festgestellt hatte, daß kernlose Teilstücke einer Zelle nach einiger Zeit unfehlbar zugrunde gehen, während kernhaltige sich zu vollständigen Zellen regenerieren und durch Zellteilung weiter fortpflanzen, wurde durch GRUBER[634] auf experimentellem Wege an anderen Infusorien bestätigt und als direkter Beweis für die Alleinherrschaftstheorie des Kerns ins Feld geführt. GRUBER[635] sagt: „Auf rein empirischem Wege werden wir hier vor die unumstößliche Tatsache gestellt, daß der Kern der wichtigste, daß er der arterhaltende Bestandteil der Zelle ist, und daß man ihm mit Recht die höchste Bedeutung bei den Vorgängen der Befruchtung und Vererbung zuschreibt.“ GRUBER vergißt aber dabei, daß man, um den Kern allein als arterhaltenden Bestandteil der Zelle hinstellen zu dürfen, auch noch das umgekehrte Experiment ausführen, nämlich auch den Kern ohne Protoplasma untersuchen muß. Bleibt dann der Kern am Leben, regeneriert er sich einen neuen Protoplasmakörper, und vervollständigt er sich zu einem ganzen Individuum, so wäre sein Versuch in der Tat ein „unumstößlicher Beweis“ für die Ansicht von der allumfassenden Bedeutung des Kerns gewesen. Geht aber der protoplasmaberaubte Kern ebenso ohne Regeneration zugrunde wie das kernberaubte Protoplasma, so liegt kein Grund vor, dem Kern mehr zuzuschreiben als dem Protoplasma; man könnte dann mit demselben Recht das Protoplasma als den arterhaltenden Bestandteil der Zelle ansprechen. Ein Experiment in dieser Richtung zeigt aber, daß der protoplasmaberaubte Kern ebenso zugrunde geht wie das kernlose Protoplasma. Man kann bei dem großen Radiolar Thalassicolla (Fig. 105 p. 273) den mit bloßem Auge sichtbaren Zellkern durch eine geschickte Operation mit feinen Instrumenten aus dem Protoplasma der Zentralkapsel unverletzt herausnehmen und isoliert beobachten. Die Folge zeigt, daß der Kern, selbst wenn er vor allen Schädlichkeiten geschützt ist, nach einiger Zeit stets, ohne auch nur eine Spur von Regenerationsvorgängen sehen zu lassen, zugrunde geht [636]. Das gleiche kann man bei Infusorien konstatieren. Damit ist aber die Beweiskraft des GRUBERschen Arguments gebrochen.
Ein anderes Experiment, das der Alleinherrschaftstheorie des Kerns zur Stütze dienen sollte, stellte BOVERI[637] an Seeigeleiern an. Im Anschluß an die von den Brüdern HERTWIG[638] beobachtete Tatsache, daß auch kernlose Protoplasmastücke von Seeigeleiern durch Spermatozoen noch befruchtet werden, fand BOVERI, daß diese befruchteten Stücke sich auch noch weiter entwickeln, und zwar zu einer Zwerglarvenform, die, abgesehen von ihrer Kleinheit, im übrigen vollkommen den normalen Larven gleicht. Diese Tatsache benutzte BOVERI zu Kreuzbefruchtungsversuchen von kernlosen Eistücken einer Seeigelform mit Spermatozoen einer andern Form, nämlich von kernlosen Eistücken des Sphaerechinus granularis mit Spermatozoen von Echinus microtuberculatus. Er schüttelte eine Anzahl Eier von Sphaerechinus in einem Reagenzglase, wobei immer kernlose Protoplasmastücke abgesprengt werden, und befruchtete die geschüttelte Flüssigkeit mit Sperma von Echinus. Isolierte kernlose Teilstücke zu befruchten, gelang nicht, da eine Kreuzbefruchtung zwischen den beiden Formen nur verhältnismäßig sehr selten eintritt. Unter den durch die Befruchtung erzielten Larven befanden sich:
Bastardformen, wie sie bei der Kreuzung der beiden Arten immer erhalten wurden;
Zwergbastardformen, die BOVERI von der Befruchtung kernhaltiger Teilstücke herleitet;
Zwergformen mit echtem Echinus-Charakter, die BOVERI von der Befruchtung kernloser Teilstücke ableitet.
Das Vorkommen der letzten Larvenformen besitzt nun nach BOVERIs Auffassung direkte Beweiskraft für die Alleinherrschaftstheorie des Kerns, denn da von der einen Seeigelart nur kernloses Protoplasma der Eizelle, von der andern dagegen auch der Kern des Spermatozoons übertragen sei, so sei durch den Erfolg, welcher Larven von der väterlichen Form ergeben habe, bewiesen, daß nur der Kern der Träger der „Vererbungsstoffe“ sein könne.
Schon bei einer kritischen Betrachtung indessen ergibt sich, daß dieser Versuch, der bisher vielfach als die feste Stütze der Alleinherrschaftstheorie betrachtet worden ist, in mehr als einer Beziehung für den genannten Zweck gar nicht verwertet werden kann. Zunächst nämlich läßt sich die Abstammung der Zwerglarven vom Typus der väterlichen Art bezweifeln. Da die Befruchtung kernloser Eistücke der einen mit Spermatozoen der andern Art nicht isoliert gelang, so bleibt es sehr fraglich, ob die in Frage stehenden Larven auch wirklich aus einer solchen Befruchtung stammten. Es wäre denkbar, daß sich auch aus der Befruchtung von kernhaltigen Eistücken oder ganzen Eiern der einen mit den Spermatozoen der andern Form Larven von überwiegend väterlicher Form entwickeln können; sehen wir doch, daß sich auf die Nachkommen sehr häufig ganz vorwiegend die Eigenschaften des Vaters oder der Mutter übertragen. Die verschiedenen Larvenformen, die BOVERI in seinem Versuch erhielt, besitzen aber in dem betreffenden Entwicklungsstadium noch so wenige charakteristische Unterscheidungsmerkmale, daß man aus dem Vorhandensein dieser wenigen Eigentümlichkeiten durchaus nicht mit Sicherheit auf eine einseitige Abstammung Schlüsse ziehen darf. Aber selbst in dem Falle, daß man die Deutung, die BOVERI von der Abstammung der betreffenden Larven gibt, annehmen wollte, wäre der Versuch doch nichts weniger als beweisend. Er wäre beweisend nur dann, wenn nicht das ganze Spermatozoon, sondern nur der Kern desselben sich mit dem kernlosen Protoplasma der Eizelle vereinigt hätte. Wären in diesem Falle Larven vom Charakter des Vaters entstanden, so müßte man in der Tat annehmen, daß der Kern allein Träger der Vererbung sein könne. Da aber das Spermatozoon eine vollständige Zelle mit Kern und Protoplasma ist, so ist durch nichts bewiesen, daß nicht auch das Protoplasma an der Vererbung teilnähme. Daß sich ganz überwiegend oder ausschließlich väterliche Charaktere an den betreffenden Larven bemerkbar machen, würde doch wohl kaum verwundern, da ja von väterlicher Seite eine ganze Zelle in die Befruchtung eingegangen sein soll, von mütterlicher Seite aber nur ein Stückchen Protoplasma. Die Ansicht BOVERIs, daß in seinem Versuch auch mütterliche Eigenschaften hätten vererbt werden müssen, wenn das Protoplasma ebenso an der Vererbung beteiligt wäre, wie der Kern, würde also, selbst wenn man seine Annahme von der Herkunft der Zwerglarven mit reinem Echinuscharakter als zutreffend hinnehmen wollte, nichts weniger als sicher begründet sein.
Schon auf Grund dieser Ueberlegungen können wir nicht umhin, auch den Versuch BOVERIs für die Entscheidung der Frage, ob im Kern allein die charakterbestimmenden Eigenschaften der Zelle enthalten sind, als völlig indifferent zu betrachten, und die gleiche Stellung zu dem Experiment BOVERIs haben auf Grund ihrer eigenen Untersuchungen in neuerer Zeit MORGAN, SEELIGER und YVES DELAGE eingenommen. Wenn es aber außer den angeführten Tatsachen noch eines Experimentum crucis bedurft hätte, um den völligen Zusammenbruch der Lehre von der Lokalisation einer spezifischen und ausschließlichen „Vererbungssubstanz“ im Zellkern ganz augenfällig zu demonstrieren, so würde dieses Experiment neuerdings ebenfalls gegeben sein durch die schönen Untersuchungen von GODLEWSKI jun. Es gelang nämlich GODLEWSKI[639] kernlose Eistücke von einem Seeigel mit den Spermatozoen einer Haarsternform, also einer ganz anderen Echinodermengruppe zu befruchten und aus ihnen unter anderem auch Larven zu züchten, die rein mütterliche Eigenschaften besaßen. Angesichts dieser Tatsache wird selbst von den eifrigsten Anhängern der BOVERIschen Lehre nicht mehr behauptet werden können, daß die „Vererbungssubstanz“ im Zellkern lokalisiert sei. Damit fällt die Alleinherrschaftstheorie des Zellkerns zusammen. In der Tat hat man schon vor GODLEWSKIs Experimenten in den letzten Jahren auch auf morphologischer Seite angefangen, diese Auffassung allmählich zu verlassen[640].
Eine andere Form der Alleinherrschaftstheorie spricht sich in der Ansicht von EIMER[641], HOFER[642] u. a. aus, daß der Kern nach Art eines nervösen Zentralorgans die Lebensäußerungen der Zelle, vor allem die Bewegungen des Protoplasmas, beherrsche. EIMER stützt sich dabei auf verschiedene, nicht ganz unangefochtene morphologische Beobachtungen über die Endigung von Nervenfasern in Kernen, sogar in Kernkörperchen von Zellen. Allein selbst wenn diese Verhältnisse sich wirklich bestätigen sollten, so würde darin doch immer noch kein Grund liegen, dem Kern allein die Regulierung der Bewegungen des Protoplasmas zuzuschieben. HOFER dagegen glaubt aus Experimenten an Amöben den Schluß ziehen zu dürfen, daß „der Zellkern ein regulatorisches Zentrum für die Bewegung darstellt“. HOFER zerschnitt nämlich den Körper von großen Amöben in einen kernhaltigen und einen kernlosen Teil. Während der kernhaltige Teil sich darauf und auch weiterhin ganz wie eine vollständige Amöbe verhielt, zeigte das kernlose Stück nur noch etwa 15–20 Minuten normales Verhalten. Dann wurden die Bewegungen unregelmäßig, indem die Pseudopodienbildung abnorme Formen zeigte, und hörten schließlich ganz auf. Daraus zieht HOFER den Schluß, daß das Protoplasma zwar die Fähigkeit der Bewegung besitzt, aber daß der Kern ein Zentrum vorstelle, das die Bewegungen des Protoplasmas reguliere. Daß diese Vorstellung sich nicht halten läßt, geht schon aus den ausgezeichneten Experimenten BALBIANIs[643] hervor, der beobachtete, daß kernlose Teilstücke von Infusorien unter günstigen Bedingungen noch viele Tage lang mit völlig unveränderten Bewegungen am Leben bleiben. Umfassende Versuche an verschiedenen Rhizopoden und Infusorien[644], besonders aber an solchen Wimperinfusorien, die recht komplizierte und charakteristische Bewegungen ausführen, sind schließlich speziell gerade darauf gerichtet gewesen, die Frage zu entscheiden, ob man den Kern als Bewegungszentrum im Sinne der Zentra des Zentralnervensystems bei den höheren Tieren auffassen dürfe. Den Erfolg können wir uns am besten durch einen vivisektorischen Versuch an dem Infusorium Lacrymaria vor Augen führen.
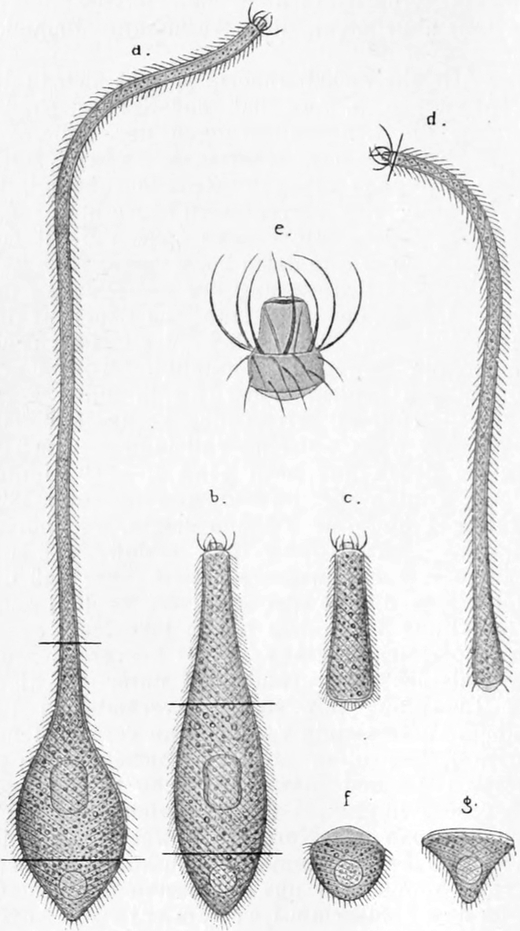
Fig. 277.
Vivisektorische Zerteilung von Lacrymaria olor
. Die schwarzen Linien geben die Schnittführung an.
e
Abgeschnittener Kopfteil, stärker vergrößert.
Lacrymaria olor wird zu den holotrichen Ciliaten gerechnet und zeichnet sich durch ihre höchst charakteristischen Bewegungen aus, weshalb sie für Versuche über den Einfluß des Kerns auf die Bewegung ein ausgezeichnetes Objekt abgibt. Das Protist ist in mittlerem Kontraktionszustande flaschenförmig und läßt einen Körper-, Hals- und Kopfteil unterscheiden (Fig. 277 a und b). Ist das Protist ungestört, so ist es in rastloser Bewegung, wobei jedem Teil des Zellleibes seine eigentümliche Tätigkeit zukommt. Der Körperteil macht fortwährende Gestaltsveränderungen von peristaltischem Charakter. Der Hals streckt sich bald zu einem äußerst langen und dünnen Faden aus, der mit seinem Vorderende sich verlängert, verkürzt, umbiegt und zwischen den Schlammteilchen hierhin und dorthin tastet (Fig. 277 a), bald schnellt er wieder wie ein ausgespannter Gummifaden plötzlich zusammen (Fig. 277 b), um nach kurzem sein Spiel von neuem zu beginnen. Das Kopfende schließlich tastet mit den langen Wimpern seines Mundteils überall auf den Gegenständen im Wasser umher, gleichsam als wenn die Wimpern wie Füßchen darauf entlang liefen. Dabei ist das ganze Protist infolge der fortwährend wechselnden Richtung des Wimperschlages in einem ewigen Vorwärts- und Rückwärtszucken begriffen, so daß es nur wenig von der Stelle kommt und hauptsächlich den langen Hals und Kopf mit rastlosem Eifer umhersuchen läßt. Wird es gereizt, so zuckt es plötzlich zusammen und schwimmt in mittlerem Kontraktionszustande zuerst eine Strecke rückwärts, nimmt dann wieder die Richtung nach vorn an und wirbelt in rasender Geschwindigkeit unter beständiger Achsendrehung vorwärts durch das Wasser.
Der Kern mit dem dicht anliegenden Nebenkern liegt im mittleren Abschnitt des Körperteils.
Bei einiger Geduld gelingt es nun, unter dem Mikroskop durch scharfe Schnitte die einzelnen Körperteile abzutrennen, wobei der Kopfteil, der Halsteil und das hintere Endstück des Körpers stets kernlos sind, während der Körperteil immer die beiderlei Kerne enthält. Der Erfolg der Durchschneidung ist zunächst bei jedem Teilstück der, daß die Wimperbewegung sehr beschleunigt ist. Die Stücke wirbeln daher alle im Kontraktionszustande mit rasender Geschwindigkeit unter Achsendrehung durch das Wasser. Allmählich läßt die enorme Steigerung der Wimpertätigkeit nach, und bald benimmt sich jedes Teilstück genau so, wie es sich benahm, als es noch im Zusammenhang mit den anderen stand. Der kernhaltige Körperteil setzt seine metabolischen Bewegungen fort, durch Wechseln in der Richtung des Wimperschlages bald vorwärts, bald rückwärts zuckend, der Halsteil zieht sich bald lang aus (Fig. 277 d) und tastet ruhelos umher, obwohl er weder Kopf- noch Körperteil mehr besitzt, bald schnellt er wie eine Gummischnur zusammen (Fig. 277 c) und streckt sich wieder aus, der Kopfteil endlich läuft, da er jetzt vom Körper befreit ist, wie ein selbständiges Individuum auf den Schlammteilchen im Wasser umher unter ganz denselben Wimperbewegungen wie am unverletzten Protist (Fig. 277 e). Kurz, jedes Teilstück verhält sich in seinen Bewegungen noch genau so wie am Körper der normalen Lacrymaria. Auf Reize tritt bei allen Teilstücken Zusammenzucken durch Kontraktion der Myoide ein und Beschleunigung des Wimperschlages, die zur Wirbelbewegung unter Achsendrehung führt, also ganz wie sie auf Reizung beim unverletzten Protist eintritt. Dieses normale Verhalten der Bewegung bleibt bei den kernlosen Teilstücken in der Regel nahezu einen Tag lang bestehen. Alsdann tritt der bekannte Unterschied zwischen kernlosen und kernhaltigen Stücken hervor, daß die kernlosen zugrunde gehen, während die kernhaltigen sich bereits zu ganzen Individuen regeneriert haben.
Das Verhalten der kernlosen Teilstücke von Zellen läßt sich also dahin charakterisieren, daß nach Ueberwindung eines durch den Reiz der Operation bedingten Erregungsstadiums jedes Stück fortfährt, die ihm am unverletzten Protist eigentümlichen Bewegungen auszuführen und auch auf Reize in derselben Weise zu reagieren, wie vor der Operation. Erst die zum Tode führenden Vorgänge der Nekrobiose, denen das kernlose Protoplasma anheimfällt, ändern auch das normale Verhalten der Bewegungen.
Wie in diesem, so zeigt sich in sämtlichen vivisektorischen Versuchen, daß die Bewegungen kernloser Protoplasmastücke nach Ueberwindung eines durch die Operation bedingten Erregungsstadiums stets noch längere Zeit, häufig mehrere Tage lang, in vollkommen unveränderter Weise fortbestehen und erst im Verlauf der Nekrobiose des Teilstücks Störungen und schließlich Stillstand erfahren. Damit stimmen auch die tatsächlichen Befunde HOFERs vollständig überein. Uebrigens hat später ŠTOLC[645] auch von Amöben kernlose Stücke unter günstigen Bedingungen wochenlang mit normalen Bewegungen isoliert am Leben erhalten können. Wenn aber die normale Bewegung des Protoplasmas nach Entfernung des Kerns noch tage- und wochenlang fortbesteht, so kann der Kern kein regulatorisches Zentrum für die Bewegung sein, und damit fällt die Zentrumstheorie in sich zusammen.
2. Kern und Protoplasma als Glieder in der Stoffwechselkette der Zelle.
Wenn aus den oben angestellten Erörterungen hervorgeht, daß die neueren Vorstellungen von der Alleinherrschaft des Kerns in der Zelle, mögen sie in dieser oder in jener Form auftreten, ebensowenig Berechtigung haben, wie die älteren Vorstellungen, die im Protoplasma allein den wesentlichen Träger des Lebens erblickten, so liegt nach alledem die Vermutung nahe, daß die Wahrheit zwischen beiden Ansichten in der Mitte gelegen ist, d. h. daß weder der Kern noch das Protoplasma allein die Hauptrolle im Leben der Zelle spiele, sondern daß beide in gleicher Weise als notwendige innere Lebensbedingungen am Zustandekommen der Lebensäußerungen beteiligt seien.
In der Tat zeigt uns die ganze Fülle aller bisherigen Versuche und Beobachtungen über die Beziehungen zwischen Zellkern und Protoplasma, daß diese Vermutung richtig ist. Da es zu weit führen würde, das ganze hierher gehörige Tatsachenmaterial anzuführen, so mögen nur die wichtigeren Erfahrungen an diesem Orte Platz finden.
Die erste und bedeutsamste Erfahrung ist die bereits erwähnte, durch alle bisherigen vivisektorischen Experimente an den verschiedenartigsten Zellen festgestellte Tatsache, daß kernlose Protoplasmamassen ebenso wie protoplasmaberaubte Kerne nach längerer oder kürzerer Zeit unfehlbar zugrunde gehen. Damit ist unzweideutig der Beweis geliefert, daß die Lebensäußerungen der Zelle nur durch die ungestörte Wechselwirkung beider Zellteile, des Kerns und des Protoplasmas, zustande kommen. Daß diese Wechselbeziehungen Stoffwechselbeziehungen sein müssen, liegt von vornherein schon auf der Hand, da ja die Lebensäußerungen nur Ausdruck des Stoffwechsels der Zelle sind. Durch die Veränderungen, die an kernberaubten Protoplasmamassen bis zu ihrem Tode sich einstellen, überzeugen wir uns aber auch an spezielleren Tatsachen von dieser Wahrheit. In der oft ziemlich langen Zeit, die von der Entfernung des Kerns bis zum Tode der entkernten Protoplasmamasse verläuft, machen sich nämlich nach und nach gewisse Ausfallssymptome im Stoffwechsel bemerkbar, während manche Lebensäußerungen noch bis in die letzte Zeit vor dem Tode bestehen bleiben. Diese Ausfallssymptome zeigen uns direkt, daß durch die Ausschaltung des Kerns der Stoffwechsel des Protoplasmas eine Störung erlitten hat.
Die eine Reihe von Ausfallssymptomen bezieht sich auf die Verarbeitung der aufgenommenen Nahrung und ist besonders gut an dem nackten Protoplasma der Rhizopoden zu beobachten. Hat man von einer Polystomella, deren zierliche, schneckenförmige Kalkschale mit einem gewöhnlich nur einkernigen Protoplasmakörper erfüllt ist, durch einen geschickten Schnitt ein Stück der Schale mit kernlosem Protoplasmainhalt abgeschnitten, so bildet das Protoplasma nach einiger Zeit wieder ganz normale Pseudopodien und verhält sich noch tagelang wie eine unversehrte Polystomella. An den mit einem feinen klebrigen Sekret überzogenen Pseudopodien fangen sich auch noch kleine Infusorien, die der Polystomella zur Nahrung dienen, ja diese Infusorien können unter Umständen auch noch durch die Einwirkung des sie umfließenden Protoplasmas der Pseudopodien getötet werden; aber es findet keine Verdauung derselben mehr statt[646]. Die gleiche Beobachtung kann man sehr gut an den großen Radiolarien machen, die, wie Thalassicolla, mit Leichtigkeit ihrer Zentralkapsel mit Kern beraubt werden können. Der ganze große kernlose Protoplasmakörper verhält sich nach dieser Operation zunächst wie eine ganze Thalassicolla. Die Pseudopodien halten anschwimmende Nahrungsinfusorien fest und umgeben sie mit ihrem Protoplasma. Auch werden die Infusorien noch getötet und bisweilen sogar in ihrer Gestalt noch deformiert; aber eine vollständige Verdauung tritt nicht mehr ein[647]. Das gleiche beobachtete HOFER[648] bei großen Exemplaren von Amöben. Wenn er Amöben, die Infusorien gefressen hatten, so unter dem Mikroskop teilte, daß in die kernhaltige sowohl wie in die kernlose Hälfte des Protoplasmas Nahrungsinfusorien zu liegen kamen, so wurden dieselben in der kernlosen Hälfte nur schwach angedaut, blieben dann aber unverändert liegen, während sie in den kernhaltigen Hälften vollständig verdaut wurden, wie in einer unversehrten Amöbe. Aus allen diesen Versuchen geht also hervor, daß die Assimilation der aufgenommenen Nahrung im Protoplasma nach Ausschaltung des Zellkerns aufhört.
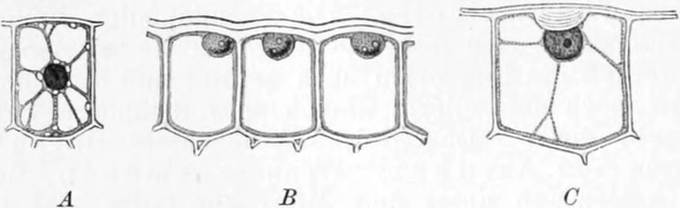
Fig. 278.
A
Epidermiszelle eines Laubblattes von Luzula maxima
. Der Zellkern liegt in der Mitte der Zelle.
B
Epidermiszelle eines Blattes von Cypripedium insigne
. Die obere Zellwand verdickt sich. Die Kerne liegen der oberen Zellwand an.
C
Epidermiszelle eines Blattes von Aloe verrucosa
. An der oberen Zellwand bildet sich ein Wulst. Der Kern liegt diesem Wulste an. Nach H
ABERLANDT
.
Ebenso wie der Verbrauch fällt auch die Produktion gewisser Stoffe von seiten des Protoplasmas nach Entfernung des Kerns aus. Eine kernlose Protoplasmamasse von Polystomella scheidet keinen kohlensauren Kalk mehr aus, um ihre Kalkschale zu ergänzen, während die kernhaltigen Stücke den Defekt ihrer Kalkschale alsbald durch Anlagerung neuer Kalkmassen an der Wundstelle wieder ausbessern[649]. Die Sekretion von Schleim seitens des nackten Protoplasmas der Amöben ist, wie HOFER[650] gezeigt hat, an kernlosen Massen nicht mehr zu beobachten, so daß die Stücke nach der Entkernung frei im Wasser flottieren, ohne sich an die Unterlage anheften zu können, während die kernhaltigen Protoplasmamassen sich bald nach der Operation wie unverletzte Amöben wieder mit einer feinen Schleimschicht an der Unterlage ankleben und weiterkriechen. Bei den kernlosen Pseudopodien von Difflugia findet zwar anfangs noch eine Schleimsekretion statt, hört aber bald nachher auf, und die Protoplasmamassen verlieren das Vermögen sich anzuheften, nach einigen Stunden ebenfalls[651]. Ein sehr charakteristisches Symptom schließlich ist der Ausfall der Zelluloseproduktion zur Bildung einer Zellwand, den KLEBS[652] bei Pflanzenzellen beobachtete. KLEBS benutzte zu seinen Versuchen die Tatsache, daß unschädliche Lösungen wasserentziehender Stoffe den Protoplasmakörper der Pflanzenzelle zur Zusammenziehung und dabei oft zum Zerfall in einzelne Protoplasmakugeln veranlassen, ein Vorgang, der von den Botanikern als Plasmolyse bezeichnet wird. Setzte er Fäden von Zygnema oder Spirogyra in eine 16-proz. Rohrzuckerlösung, so zerfiel der Protoplasmakörper der Zellen in vielen Fällen in zwei oder mehrere Kugeln, von denen nur eine den in der Einzahl vorhandenen Zellkern enthielt. Sowohl kernhaltige als kernlose Teilstücke blieben lange Zeit am Leben, selbst die kernlosen in vielen Fällen bis zu 6 Wochen. Aber es zeigte sich während dieser Zeit an beiden ein durchgreifender Unterschied: Die kernhaltigen Stücke umkleideten sich alsbald mit einer neuen Zellulosemembran, während die kernlosen stets nackt blieben. Es geht aus diesem Versuch hervor, daß der Zellkern mit seinem Stoffwechsel wesentlich an der Bildung der Zellulose beteiligt ist. Der Versuch ist aber besonders deshalb so interessant, weil er später eine wünschenswerte Ergänzung erfahren hat durch einen andern Versuch, den DEMOOR[653] an den Zellen der Spirogyrafäden angestellt hat. In analoger Weise, wie man nämlich durch vivisektorische Operationen den Einfluß des Kerns auf das Protoplasma ausgeschlossen hat, gelang es DEMOOR, durch geeignete Einwirkung verschiedener Agentien, wie Chloroform, Wasserstoff, Kälte etc., das Leben des Protoplasmas zu lähmen, während der Kern noch tätig blieb, mit anderen Worten also die Tätigkeit des Protoplasmas auszuschließen. Der Erfolg war der, daß der Kern ziemlich lange ungestört am Leben blieb, ebenso wie in den vivisektorischen Teilungsversuchen das Protoplasma nach Ausschaltung des Kerns noch lange Zeit normale Lebensäußerungen zeigt, ehe es zugrunde geht. Die Lebenstätigkeit des Kerns äußerte sich nun in DEMOORs Versuchen wie im normalen Zellenleben vorwiegend in den Vorgängen der Kernteilung. Indem der Kern, wie im ungestörten Zellleben, fortfuhr, sich zu teilen und die bekannten komplizierten Teilungsfiguren zu bilden, entstanden alsbald zwei Zellkerne, die sich voneinander trennten. Während sich aber im ungestörten Zellleben bei der Trennung beider Zellkerne im Protoplasma stets sofort eine neue Zellulosemembran bildet, welche die Teilung der ganzen Zelle in zwei Tochterzellen vollkommen macht, blieb in den Versuchen DEMOORs die Bildung einer Zellulosemembran stets unfehlbar aus, obwohl der Kern auch weiterhin noch seine normalen Lebensäußerungen zeigte. Wenn also einerseits die Versuche von KLEBS bewiesen, daß der Kern zur Bildung der Zellulose notwendig ist, so zeigen anderseits die Versuche von DEMOOR, daß auch das Protoplasma an dieser Produktion beteiligt ist. Mit anderen Worten: Die Zellulose kann nur beim Zusammenwirken von Kern und Protoplasma entstehen.
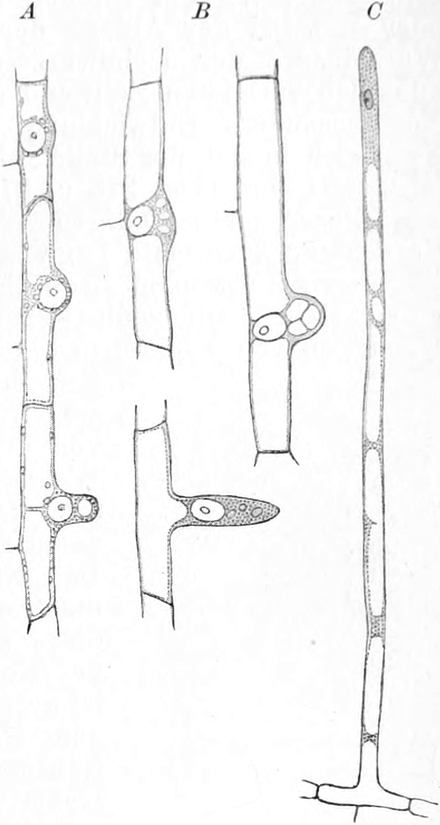
Fig. 279.
A
Zellenreihe aus der Wurzel von Pisum sativum
. An der rechten Seite ist an drei Stellen die Bildung eines Wurzelhaares im Gange. Der Zellkern liegt diesen Stellen an.
B
Drei Zellen aus der Wurzel von Cucurbita pepo
. An jeder Zelle beginnt sich ein Wurzelhaar zu bilden. Der Zellkern liegt der Stelle an, wo das Wurzelhaar sich ausstülpt.
C
Wurzelhaar von Cannabis sativa
. Der Zellkern liegt in der Spitze des Haares, wo das Wachstum stattfindet. Nach H
ABERLANDT
.
Diesen Ergebnissen der Versuche, denen sich noch zahlreiche ähnliche Erfahrungen anreihen ließen, steht eine ganze Reihe von morphologischen Beobachtungen an den verschiedenartigsten Zellen zur Seite, die sämtlich auf einen regen Stoffaustausch zwischen Kern und Protoplasma hinweisen. Von hohem Interesse sind die von HABERLANDT[654] an Pflanzenzellen und von KORSCHELT an tierischen Zellen nachgewiesenen Lagebeziehungen des Kerns zu gewissen von der Zelle produzierten oder aufgenommenen Stoffen. Die Untersuchungen von HABERLANDT betreffen die Wachstumsvorgänge der Zellmembran. An einem umfangreichen Material hat HABERLANDT festgestellt, daß in den Fällen, wo es sich um lokale Wachstumsvorgänge der Zellwand bei ihrer endgültigen Ausgestaltung handelt, wie etwa bei den Verdickungen an der Außenseite der Epidermiszellen oder bei der Bildung der Leisten an den Spaltöffnungszellen oder wie bei der Anlage der durch Spitzenwachstum entstehenden Wurzelhaare der Keimwurzeln, oder auch wo Regenerationen der künstlich verletzten Zellwand eintreten, kurz, daß in allen Fällen, wo eine besondere Entwicklung des Zellwandmaterials stattfindet, der Kern sich immer der Stelle anlagert, an der diese Wachstumsvorgänge lokalisiert sind (Fig. 278 u. 279). Vor Beginn und ebenso nach Ablauf dieser mannigfaltigen Wachstumsprozesse dagegen nimmt der Kern keine bestimmte Lage in der Zelle ein (Fig. 278 A).
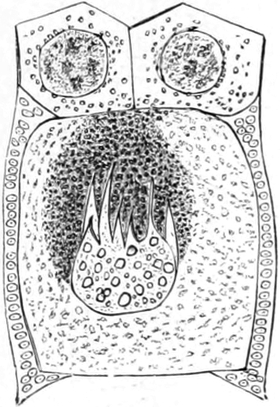
Fig. 280.
Eizelle von Dytiscus marginalis, darüber zwei Nährzellen
. Aus den Nährzellen tritt Nährmaterial in die Eizelle hinein, und der Kern der Eizelle sendet spitze Pseudopodien nach diesem Material aus. Nach K
ORSCHELT
.
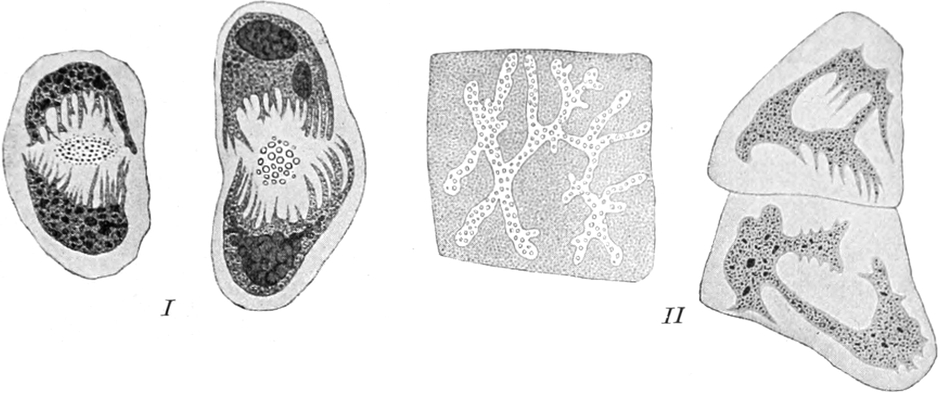
Fig. 281.
Gestalt des Zellkerns in sezernierenden Zellen
.
I
Doppelzellen mit je zwei Kernen aus den Eifollikeln von Nepa cinerea. Zwischen beiden Kernen wird Chitinmasse zur Bildung eines Eistrahls ausgeschieden, und die beiden Kerne haben nach dieser Seite hin Pseudopodien ausgestreckt, so daß die ausgeschiedene (körnige) Chitinmasse ringsherum von Kernpseudopodien eingeschlossen ist.
II
Sezernierende Zellen aus den Spinndrüsen von Raupen. Nach K
ORSCHELT
.
Den umfassenden Beobachtungen von HABERLANDT an Pflanzenzellen stehen auf zoologischem Gebiet die ausgezeichneten Untersuchungen von KORSCHELT[655] zur Seite. KORSCHELT hat hauptsächlich Eizellen und sezernierende Zellen von Insekten studiert. In den Eiröhren der Ovarien von Dytiscus marginalis, einem großen Wasserkäfer, liegen die einzelnen Eizellen, je zwei durch ein sogenanntes Nährfach voneinander getrennt, perlschnurartig hintereinander. Das Nährfach besteht aus Zellen, die Nährmaterial für die Eizelle produzieren und an diese abgeben. Das Verhalten und die Lage des Kerns der Eizelle zu diesem Nährmaterial ist nun sehr charakteristisch (Fig. 280). Von dem Nährfach zieht eine Körnermasse, das Nährmaterial, in die Eizelle hinein, und zwar lagert sie sich hier derartig, daß sie direkt mit dem Kern in engste Berührung kommt. Das Interessanteste aber, was die Aktivität des Kerns dem Nährmaterial gegenüber ganz augenfällig macht, ist, daß der Kern in die Körnermasse hinein und zwar nur nach der Seite hin, wo dieselbe ihn berührt, spitze pseudopodienartige Ausläufer entsendet und so seine Oberfläche an der Berührungsstelle mit dem Nährmaterial in ausgiebigster Weise vergrößert. Umgibt ihn das Nährmaterial an seiner ganzen Oberfläche, so zeigt auch die ganze Oberfläche pseudopodienartige Ausläufer. Ein ähnliches Verhalten, besonders was die Lagerung des Kerns betrifft, schildert KORSCHELT von einer ganzen Reihe von Arthropoden- und Cölenteraten-Eizellen. Ein Gegenstück zu diesen Beobachtungen der Stoffaufnahme von seiten des Kerns bildet das interessante Verhalten der Kerne in sezernierenden Zellen bei der Stoffabgabe. Hier finden sich gegenüber den produzierten Stoffen ganz analoge Beziehungen wie in den Eizellen gegenüber den aufgenommenen Stoffen. An den Eiern einiger Wasserwanzen, Nepa, und Ranatra, befinden sich eigentümliche chitinöse Anhänge, die sogenannten „Eistrahlen“, die von eigens dazu differenzierten Zellen gebildet werden. Diese Zellen, von denen je zwei sich zu einer von KORSCHELT als „Doppelzelle“ bezeichneten einheitlichen Zelle mit zwei Kernen vereinigen, nehmen eine beträchtliche Größe an und scheiden innerhalb ihres Körpers selbst die Chitinmasse aus. Dabei ist das Verhalten der beiden Kerne sehr charakteristisch (Fig. 281 I). Sie entsenden nämlich nach der Mitte, wo die Chitinausscheidung stattfindet, zahlreiche, häufig verzweigte, pseudopodienartige Fortsätze, die eine sehr bedeutende Oberflächenvergrößerung bewirken, während die ganze übrige Oberfläche der Kerne glatt bleibt. Derartige Oberflächenvergrößerungen der Kerne sind bei den sezernierenden Zellen der Insekten überhaupt weit verbreitet (Fig. 281 II) und weisen darauf hin, daß der Stoffaustausch zwischen Protoplasma und Kern bei der Sekretion ein sehr reger sein muß. Dem entspricht auch die von HEIDENHAIN[656] beobachtete Tatsache, daß sich die Kerne der Speicheldrüsenzellen im Zustande der Ruhe und im Zustande angestrengter Sekretion wesentlich verschieden verhalten, indem nämlich in der Ruhe der Kern zackige Ausläufer in das umgebende Protoplasma entsendet, während er nach anhaltender Reizung eine runde Gestalt mit glatter Oberfläche besitzt. Ferner hat BAUM[657] gefunden, daß die Kerne ruhender Drüsenzellen sich mit Kernfärbemitteln viel dunkler färben als die Kerne solcher Drüsenzellen, die stark sezerniert haben, ein Zeichen, daß das Chromatin bei der Sekretion zersetzt sein muß. Auch LILY HUIE[658] hat neuerdings sehr tiefgehende Veränderungen des Zellkerns im Zustande gesteigerter Tätigkeit der Zelle gefunden, und zwar bei den sezernierenden Zellen der insektenfressenden Sumpfpflanze Drosera, wenn dieselbe mit Eiereiweiß gefüttert wurde. An dem koloniebildenden Infusor Carchesium hat Miß GREENWOOD[659] ebenfalls Veränderungen des Kerns beobachtet, die parallel mit der Ernährung der Zelle sich entwickeln. Die Ermüdungsveränderungen, die HODGE, LUGARO, MANN, HOLMES u. a. an Ganglienzellen bei angestrengter Tätigkeit festgestellt haben, und die wir bereits früher[660] kennen lernten, gehören in dieselbe Gruppe von Tatsachen, und das gleiche gilt von der Beobachtung O. HERTWIGs[661], daß in dotterreichen Eizellen der Kern sich immer nach der Stelle der größten Protoplasmaansammlung hin bewegt. Schließlich kann bei den verschiedenartigsten Zellformen während des Zelllebens vielfach ein bemerkenswerter Wechsel in der Größe des Kerns beobachtet werden[662], der nur dadurch zustande kommen kann, daß der Kern Stoffe aus dem Protoplasma aufnimmt und an dasselbe abgibt.
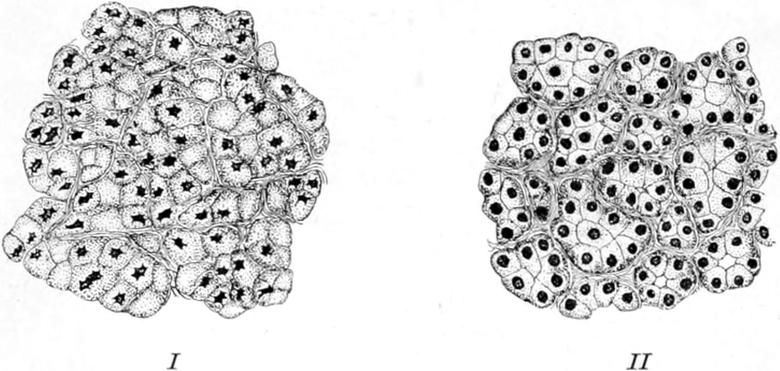
Fig. 282.
Speicheldrüsenzellen
.
I
In der Ruhe. Die Zellkerne haben sternförmige Gestalt.
II
Nach Reizung der Drüse. Die Kerne sind rund. Nach H
EIDENHAIN
.
In der überwiegenden Mehrzahl der Fälle wird wegen der Existenz einer Kernmembran nur der Austausch flüssiger Stoffe zwischen Kern und Protoplasma möglich sein. In manchen Fällen aber, wo durch das Fehlen oder Verschwinden der Kernmembran die Möglichkeit eines Austausches von geformten Massen gegeben ist, haben eine ganze Reihe von Beobachtern, wie FROMMANN, AUERBACH, LEYDIG, BRASS, STUHLMANN u. a., auch direkt eine Aufnahme oder Abgabe von Körnchen und Schollen seitens des Kerns gefunden. Ja in gewissen Stadien des Entwicklungskreises mancher Zellen kommt regelmäßig ein Zerfall des Kerns in viele kleine Partikel vor, die vom Protoplasma resorbiert werden. So erinnern wir uns z. B. an das von R. HERTWIG[663] beobachtete Verhalten der Kerne bei der Konjugation der Wimperinfusorien[664], wo die ansehnlichen Massen der Makronuclei im Protoplasma zu lauter einzelnen Partikeln zerfallen und vollständig resorbiert werden, während die Mikronuclei durch Stoffaufnahme bedeutend wachsen, ihre Substanz differenzieren, sich teilen und einerseits neue Mikronuclei, anderseits neue Makronuclei hervorbringen, die ganz bedeutende Größenzunahme im Protoplasma erfahren.
Es ist nicht nötig, die Aufzählung von Tatsachen noch weiter auszudehnen. Aus den angeführten Versuchen und Beobachtungen geht zur Genüge hervor, daß zwischen Protoplasma und Kern ein wechselseitiger Austausch von Stoffen besteht, ohne den keiner von beiden Zellteilen auf die Dauer existieren kann. Mit anderen Worten: Kern und Protoplasma sind beide am Stoffwechsel der ganzen Zelle beteiligt und für sein Bestehen unentbehrlich.
B. Ableitung der elementaren Lebensäußerungen aus dem Stoffwechsel der Zelle.
1. Die Stoffwechsel-Mechanik der Zelle.
a) Stoffwechselschema der Zelle.
Durch die Einfügung des Kerns und Protoplasmas in den Stoffwechselkreislauf nimmt der Mechanismus des Stoffwechsels in der Zelle eine große Komplikation an. Wenn wir uns auch bei unserer mangelnden Kenntnis der speziellen chemischen Prozesse in der lebendigen Substanz zur Zeit noch keine genauere Vorstellung davon machen können, wie der Stoffwechsel des Biogens sich im Schema der Zelle mit differenziertem Kern und Protoplasma gestaltet, wie die einzelnen Glieder dieses Stoffwechsels auf beide Zellteile verteilt sind, so können wir uns doch auf Grund der bisherigen Erfahrungen wenigstens ein Bild von der großen Komplikation des Stoffwechselgetriebes machen, indem wir uns die Beziehungen zwischen dem umgebenden Medium und der Zelle mit ihrem Protoplasma und Kern in einem Schema veranschaulichen. In diesem Schema müssen die Wechselbeziehungen zwischen den drei Faktoren: dem äußeren Medium, dem Protoplasma und dem Kern, verzeichnet sein.
Zu diesem Zweck ist es nötig, noch einige neue Tatsachen kennen zu lernen. Wenn sich aus den Ausfallssymptomen, die wir an kernlosen Protoplasmamassen einerseits und an kernhaltigen Zellen mit ausgeschaltetem Protoplasma anderseits feststellen konnten, bezüglich vieler Stoffwechselvorgänge eine weitgehende Abhängigkeit des Kerns und des Protoplasmas voneinander ergibt, so geht für manche andere Leistungen aus einigen Versuchen eine gewisse Unabhängigkeit beider Zellbestandteile voneinander hervor. Es gibt nämlich gewisse Vorgänge, die auch nach Entfernung des Kerns am Protoplasma noch lange Zeit bestehen bleiben. Allein wir haben unter diesen Vorgängen zwei Gruppen voneinander zu unterscheiden. Die einen nämlich dauern nur deshalb noch eine Zeitlang fort, weil auch nach dem Herausnehmen des Kerns aus dem Protoplasma immer noch gewisse Mengen vom Kern abgegebener Stoffe, die wir kurz als Kernstoffe bezeichnen wollen, im Protoplasma vorhanden sind; denn da ja der Kern fortwährend Stoffe an das Protoplasma abgibt, so finden sich im Protoplasma selbst stets noch gewisse Mengen dieser Stoffe vor, die mit der Herausnahme des Kerns nicht entfernt werden können. Auf Kosten dieser noch aus der Zeit vor der Entkernung im Protoplasma vorhandenen Stoffe können also gewisse Vorgänge, zu deren Zustandekommen die Kernstoffe durchaus notwendig sind, noch eine Zeitlang fortbestehen. Erst mit dem Verbrauch dieser Stoffe hören dann auch die betreffenden Vorgänge auf. Etwas anders aber verhält es sich mit der anderen Gruppe von Stoffwechselvorgängen, die auch nach der Entfernung des Kerns im Protoplasma bestehen bleiben. Sie sind nicht unmittelbar von der Anwesenheit der Kernstoffe abhängig, d. h. die vom Kern an das Protoplasma abgegebenen Stoffe sind nicht unmittelbar zu ihrem Zustandekommen erforderlich. Daß solche Vorgänge existieren, zeigen uns die von KLEBS[665] an plasmolysierten Zellen von Spirogyra gefundenen Tatsachen, die GERASSIMOFF[666] später in vollem Umfange bestätigt hat. Wenn KLEBS die Zellen eines Spirogyrafadens durch Plasmolyse in einer 16-proz. Rohrzuckerlösung zum Zerfall in einzelne Protoplasmaklumpen brachte, so entstanden häufig Protoplasmastücke, die keinen Kern, aber noch Fetzen des Chlorophyllbandes der Zelle besaßen. GERASSIMOFF[667] hat auch durch Anwendung von Narcoticis auf Spirogyrazellen, die in Teilung begriffen waren, vollständig kernfreie Zellen erhalten. Solche kernlose Protoplasmamassen lebten in den Versuchen von KLEBS unter günstigen Verhältnissen noch wochenlang weiter. Wie wir bereits früher sahen, hatten sie im Gegensatz zu den kernhaltigen Protoplasmamassen die Fähigkeit, eine neue Zellulose-Membran zu bilden, verloren. Dagegen blieben bei ihnen, wie KLEBS fand, andere Lebensäußerungen noch unverändert erhalten. Die kernlosen Protoplasmamassen verbrauchten nämlich, wenn sie im Dunkeln gehalten wurden, die in ihnen enthaltene Stärke vollständig und bildeten, falls sie noch ein Stück Chlorophyll besaßen, im Licht von neuem Stärke. Das heißt mit anderen Worten: die Synthese der Stärke aus Kohlensäure und Wasser, sowie der weitere Verbrauch der Stärke ist bis zu einem gewissen Grade unabhängig vom Einfluß des Kerns. „Bis zu einem gewissen Grade“, denn wenn die anderen durch die Entfernung des Kerns bedingten Ausfallssymptome einen bestimmten Umfang erreicht haben, werden selbstverständlich auch die stärkebildenden Chlorophyllkörper in Mitleidenschaft gezogen werden; sie werden selbst Veränderungen erfahren, keine Stärke mehr bilden und schließlich zugrunde gehen. Aber das tritt in dem vorliegenden Falle erst verhältnismäßig spät, häufig erst nach mehreren Wochen ein. Insofern also mit der Störung des ganzen Stoffwechsels durch Entfernung des Kerns auch der Stoffwechsel der Chlorophyllkörper gestört wird, ist die Stärkebildung auch in gewisser Weise, aber nur mittelbar, vom Kern abhängig.
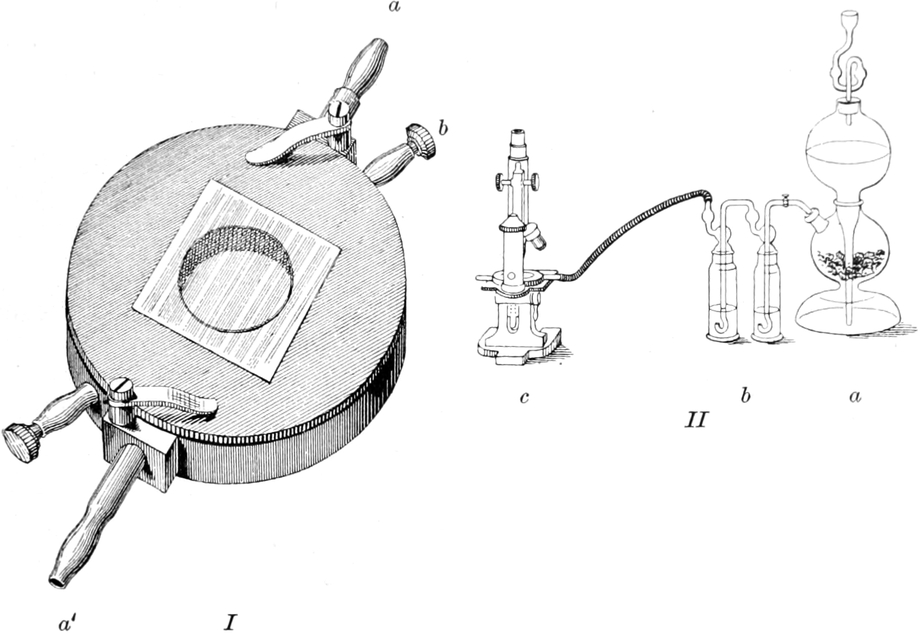
Fig. 283.
I
E
NGELMANN
sche
Gaskammer
. Ein ringförmiger Hohlraum ist unten von einer Glasplatte geschlossen und oben von einem Metalldeckel bedeckt, der in seiner Mitte ein Deckglas für die Untersuchung im hängenden Tropfen besitzt;
a
a
′ sind Heizröhren, die in den Hohlraum des Ringes selbst münden, so daß der Ring durch durchströmendes warmes Wasser geheizt werden kann;
b
b
′ sind Röhren, die in die glasbedeckte Kammer selbst einmünden und zum Hindurchleiten des Gases dienen, so daß der am Deckglas hängende Tropfen mit seinem lebendigen Inhalt in der Kammer vom Gase umspült wird.
II
Versuchsanordnung zur Untersuchung in reinem Wasserstoff
.
a
K
IPP
scher Apparat zur Wasserstoffentwicklung,
b
zwei Waschflaschen zur Reinigung des Wasserstoffs,
c
Mikroskop, unter dem sich die Gaskammer mit hängendem Tropfen befindet.
Ebenso wie in der Pflanzenzelle kernlose Protoplasmamassen, falls sie nur noch ein Stück Chlorophyllkörper haben, Kohlensäure spalten und Stärke synthetisch erzeugen, ebenso vermag auch das kernlose Protoplasma noch lange Zeit zu atmen. Den Beweis dafür, daß die Atmung an kernlosen Protoplasmastücken noch in demselben Maße fortdauert, wie an kernhaltigen Stücken oder ganzen Zellen, liefert uns folgender Versuch[668]. Wir bringen in den hängenden Tropfen einer ENGELMANNschen Gaskammer[669] eine Anzahl von kernhaltigen und kernlosen Teilstücken von Infusorien zusammen mit unverletzten Individuen und lassen von einem KIPPschen Apparat her (Fig. 283 II) einen Strom reingewaschenen Wasserstoffs durch die Gaskammer streichen, der die in der Kammer befindliche Luft in kurzer Zeit verdrängt. Dann sehen wir, daß in der Regel schon nach 5–10 Minuten die kernlosen Teilstücke sowohl wie die kernhaltigen als auch die unverletzten Infusorien anfangen, körnig zu zerfallen. Wird dann sehr schnell der Wasserstoff abgestellt und frische Luft statt dessen eingelassen, so gelingt es häufig, den vollständigen Zerfall noch zu verhüten, der sonst unfehlbar nach kurzer Zeit eintritt. Daraus geht hervor, daß auch in den kernlosen Protoplasmamassen noch ebenso Oxydationsprozesse stattfinden, wie in den kernhaltigen und in der unverletzten Zelle. Man könnte bei den Versuchen mit Wasserstoff allerdings noch an die entfernte Möglichkeit denken, daß Wasserstoff doch vielleicht nicht vollkommen indifferent für die lebendige Substanz wäre. Ein solcher Einwand würde wegfallen, wenn die Versuche mit absolut reinem Luftstickstoff gemacht würden, der, wie wir wissen, in der Tat vollkommen indifferent ist. Nachdem seit einigen Jahren die Verwendung von reinem Luftstickstoff für physiologische Zwecke im Göttinger Laboratorium methodisch in größerem Maßstabe durchgeführt worden ist, sind denn auch die obigen Versuche mit reinem Luftstickstoff an Spirostomum ambiguum wiederholt worden[670]. Die intakten Individuen sowohl wie die kernhaltigen als auch die kernlosen Teilstücke erstickten bei diesen Versuchen ebenfalls innerhalb einiger Minuten. Dabei kam es immer zu einer Verlangsamung der Wimperbewegung bis zum völligen Stillstand. Wurde nach Eintritt des Stillstandes der Wimperbewegung sofort wieder Luft durch die Kammer gelassen, so erholten sich sowohl kernlose, wie kernhaltige Teilstücke wieder vollständig. Erneute Sauerstoffentziehung rief erneute Lähmung, erneute Sauerstoffzufuhr erneute Erholung an beiderlei Teilstücken hervor. Mit der Entziehung und Zufuhr von Sauerstoff werden also die Lebensäußerungen bei intakten Zellen, bei kernlosen und bei kernhaltigen Teilstücken gelähmt und wiederhergestellt. Daraus geht mit voller Sicherheit hervor, daß im Protoplasma der aeroben Zelle ein Sauerstoffverbrauch stattfindet. Aus der Tatsache aber, daß sowohl bei der Erstickung wie bei der erneuten Zufuhr von Sauerstoff die kernhaltigen wie die kernlosen Teilstücke ein übereinstimmendes Verhalten zeigen, ergibt sich ferner einwandfrei, daß der Zellkern weder ein Oxydationsorgan, wie LOEB geglaubt hat, noch ein Sauerstoffdepot der Zelle sein kann, sondern daß die Atmung des Protoplasmas vom Zellkern unabhängig erfolgt. Auch PROWAZEK[671] hat kürzlich durch Versuche mit Neutralrot an verschiedenen Infusorien und Seeigeleiern gezeigt, daß in kernlosen Protoplasmamassen noch Oxydationsprozesse stattfinden, daß also der Kern nicht zum Zustandekommen derselben erforderlich ist. Aus allen diesen Versuchen geht allerdings noch nicht mit Sicherheit hervor, ob nicht etwa im Kern ebenfalls Oxydationsprozesse stattfinden, wie im Protoplasma. Allein eine solche Annahme wäre in hohem Grade unwahrscheinlich schon wegen der zentralen Lage des Zellkerns in der Zelle, die ihn für den Sauerstoffwechsel sehr ungeeignet machen würde. Aber auch abgesehen davon sprechen noch folgende Momente sehr stark gegen die Annahme von Atmungsvorgängen im Zellkern. Erstens sind bei den Erstickungsversuchen in Stickstoff am Zellkern niemals irgendwelche mikroskopische Veränderungen zu sehen, während am Protoplasma sehr tiefgehende Veränderungen auftreten. Zweitens aber hat DEMOOR[672] in seinen Versuchen an Spirogyren, die er in reinen Wasserstoff brachte, gefunden, daß das Protoplasma bald alle Lebensäußerungen einstellte, während der Kern keine Störungen zeigte und ruhig fortfuhr sich zu teilen. Es scheint demnach, als ob die Atmung ausschließlich im Protoplasma lokalisiert wäre, als ob der Kern nicht an den Oxydationsprozessen direkt teilnähme. Die Annahme LOEBs, der Kern sei das Oxydationsorgan der Zelle, ist bloße Phantasie.
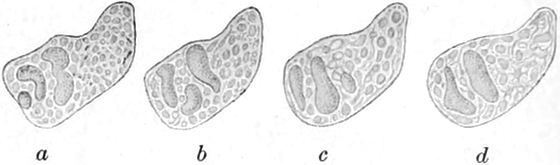
Fig. 284.
Leukocyt vom Frosch
in einem Grade der Chloroformnarkose, wo das Protoplasma vollständig gelähmt ist, während der Kern noch amöboide Bewegungen macht. Vergl.
a
,
b
,
c
u.
d
. Nach D
EMOOR
.
Nach den Erfahrungen an kernlosen Protoplasmamassen wäre es wünschenswert, auch an protoplasmaberaubten Kernen analoge Versuche darüber anzustellen, ob noch gewisse Stoffwechselvorgänge nach Ausschaltung des Protoplasmas längere Zeit ungestört fortdauern. Allein die Entscheidung dieser Frage stößt auf große Schwierigkeiten aus dem einfachen Grunde, weil wir am Kern nur schwer ein äußerlich wahrnehmbares Kriterium für seinen Stoffwechsel auffinden können. Dennoch geht aus den bereits genannten Untersuchungen von DEMOOR deutlich hervor, daß auch der Kern nach Ausschaltung des Protoplasmas noch längere Zeit Lebensäußerungen zeigt. DEMOOR narkotisierte Zellen von Spirogyra mit Chloroform, so daß das Protoplasma vollständig gelähmt war, und fand, daß der Kern trotzdem ungestört seine komplizierten Teilungsstadien durchlief und die charakteristischen Veränderungen zeigte, die er in der unversehrten Zelle bei der Zellteilung bemerken läßt. In den Leukocyten des Frosches besitzt der Kern amöboide Beweglichkeit, und DEMOOR konnte durch Narkose mit Chloroform das Protoplasma lähmen, ohne daß der Kern seine amöboiden Bewegungen einstellte (Fig. 284). Diese Erfahrungen lassen erkennen, daß auch einzelne Vorgänge im Kern in gewissem Maße unabhängig vom Einfluß des Protoplasmas stattfinden. Freilich läßt sich vorläufig nicht entscheiden, ob diese Vorgänge nur deshalb noch fortbestehen, weil auch nach der Ausschaltung des Protoplasmas immer noch Protoplasmastoffe im Kern enthalten sind, die erst verbraucht werden müssen, ehe die betreffenden Vorgänge aufhören, oder ob diese Vorgänge in der Tat nicht unmittelbar von den Stoffen des Protoplasmas abhängig sind. Vermutlich werden auch hier beide Fälle verwirklicht sein, denn auch die letztere Möglichkeit hat sehr viel Wahrscheinlichkeit für sich, wenn wir daran denken, daß der Kern jedenfalls auch direkte Stoffwechselbeziehungen zu dem äußeren Medium besitzt, die ohne Vermittlung des Protoplasmas verlaufen. Ohne Zweifel gibt es Stoffe, die vom äußeren Medium durch das Protoplasma hindurch unverändert in den Kern gelangen, um hier für den Stoffwechsel benutzt zu werden. Sicher ist dies von einer bestimmten Wassermenge der Fall, die ja unbedingt zu jedem Lebensprozeß notwendig ist. Das Wasser kann auch beständig durch die Zellmembran in das Protoplasma und durch die Kernmembran in den Kern hinein diffundieren. Mit dem Wasser aber werden jedenfalls auch manche Stoffe, die in ihm gelöst sind, von außen in den Kern hinein gelangen und hier zu chemischen Umsetzungen verbraucht werden.
Schließlich ist anzunehmen, daß nicht alle Stoffe, die der Kern nach außen abgibt, vom Protoplasma zu Umsetzungen benutzt werden, sondern daß auch einige als unbrauchbar das Protoplasma passieren und nach außen befördert werden.
Um eine anschauliche Vorstellung davon zu gewinnen, wie eng und fest der Kern in den Stoffwechsel der Zelle verwebt ist, und welche Komplikationen des Stoffwechsels in der Zelle durch die Einfügung des Kerns in seinen Kreislauf bedingt sind, ist es zweckmäßig, die experimentell gewonnenen Tatsachen zu einem Schema zu vereinigen, wie es die beistehende Fig. 285 zur Anschauung bringt[673]. Das Schema stellt eine Zelle mit Kern vor, in der jeder Pfeil eine Summe von Stoffen auf ihrem Wege im Stoffkreislauf bezeichnet.
Die Zelle nimmt gewisse Stoffe von außen auf, von denen ein Teil (a) bereits im Protoplasma beim Zusammentreffen mit den im Protoplasma vorhandenen Stoffen Spaltungen und Synthesen erfährt. Von den aus diesen Umsetzungen hervorgehenden Stoffen wird ein Teil (b) als unbrauchbar alsbald wieder ausgeschieden; ein anderer Teil (c) bleibt im Protoplasma und wird hier weiter verwendet; ein dritter Teil (d) wird dagegen dem Kern zugeführt. Der Kern erhält außerdem noch einen Teil der von außen aufgenommenen und unverändert durch das Protoplasma gegangenen Stoffe (e). Die in den Kern eintretenden Stoffe (d + e) erfahren ihrerseits wieder im Kern gewisse Umsetzungen, aus denen wieder Stoffe resultieren, die zum Teil nach außen abgegeben werden, ohne vom Protoplasma verändert zu sein (f), zum Teil in das Protoplasma gelangen, um hier weitere Verwendung zu finden (h), und zum Teil im Kern selbst bleiben (g).
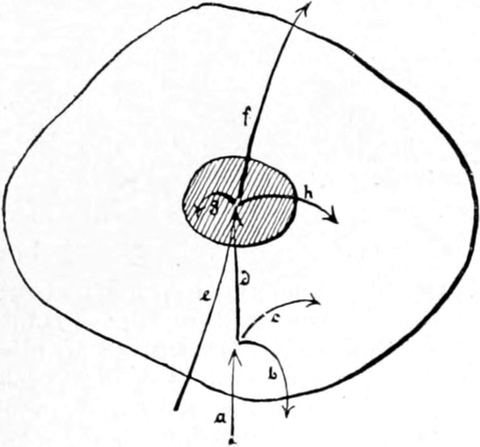
Fig. 285.
Schema des Stoffwechsels der Zelle
. Die Pfeile geben die Richtung der Stoffwanderung an.
Wenn wir uns nun klar machen, daß jeder Pfeil eine ganze Summe von Stoffen repräsentiert, daß die vom Kern an das Protoplasma abgetretenen Stoffe mit den von außen eintretenden auch wieder Umsetzungen eingehen, daß endlich die aus diesen Umsetzungen hervorgehenden Stoffe zum Teil wieder dem Kern zugeführt werden, so erhalten wir ungefähr einen Begriff, wie eng die Stoffwechselverkettung des Kerns mit dem Protoplasma ist.
Ferner müssen wir uns erinnern, daß bei allen unseren Betrachtungen Kern und Protoplasma eine große Summe von verschiedenen, in vielen Fällen sogar morphologisch differenten Körpern vorstellt, daß in dem Begriff „Kern“ auch alle als Nebenkerne, Mikronuclei etc. bezeichneten Gebilde zusammengefaßt sind, daß unter „Protoplasma“ die ganze Summe von verschiedenen Differenzierungsprodukten, auch Chlorophyllkörper, Zentrosome etc., verstanden ist. Erst wenn wir berücksichtigen, daß alle die differenten Körper der Kernsubstanz und ebenso die Körnchen, Zentrosome, Chlorophyllkörper etc. des Protoplasmas wenigstens zeitweilig selbst am Stoffwechsel beteiligt sind, daß jeder ein Glied des gesamten Stoffwechsels bildet, erst dann gewinnen wir eine annähernde Vorstellung von der gewaltigen Komplikation des Stoffwechsels in der winzigen Zelle und von den unendlich vielseitigen Beziehungen, durch die der Kern und das Protoplasma untereinander verknüpft sind.
Aus diesen engen Stoffwechselverknüpfungen ergibt sich eine weitgehende Korrelation zwischen den einzelnen Elementen der Zelle, speziell zwischen dem Kern und dem Protoplasma. Das eine ist durch das andere bedingt. Eines ist auf die Stoffe, die das andere produziert, angewiesen. So erklären sich die tiefgreifenden Veränderungen, die das Leben der Zelle erfährt, wenn sich einzelne Glieder der großen Stoffwechselkette, sei es spontan im Laufe der Entwicklung, sei es infolge der Einwirkung von äußeren Reizen, verändern. Jede Veränderung eines Gliedes im Biotonus hat auch eine Veränderung vieler anderer Glieder zur Folge, und fällt ein Glied aus irgendwelchem Grunde gänzlich fort, so ist die Stoffwechselkette durchbrochen, und es beginnt die Nekrobiose, die schließlich mit dem Tode endigt.
** *
b) Mechanik der Aufnahme und Abgabe von Stoffen.
Nachdem wir hiermit ein allgemeines Bild von den vielverschlungenen Wegen des Stoffwechsels in der Zelle gewonnen haben, bleibt uns noch die Frage übrig, wie dieses Getriebe mechanisch unterhalten wird. Da es sich bei den Stoffwechselbeziehungen zwischen dem Kern und dem Protoplasma ebenso wie zwischen der ganzen Zelle und dem Medium um die Aufnahme und Abgabe von Stoffen handelt, so läßt sich die Frage auch einfach in dem Problem zusammenfassen, wie die Aufnahme und Abgabe von Stoffen seitens der Zelle mechanisch zustande kommt.
Es ist zweckmäßig, dabei die Aufnahme und Abgabe von gelösten Stoffen und die Aufnahme und Abgabe von geformten Stoffen gesondert zu betrachten.
Man hat lange Zeit den Austausch von gelösten Stoffen zwischen Zelle und umgebendem Medium, und zwar sowohl die Resorption wie die Sekretion, für Vorgänge gehalten, die sich ohne weiteres aus den Gesetzen der Filtration und Diffusion ergeben. Allein in neuerer Zeit ist man auf verschiedene Tatsachen aufmerksam geworden, die beweisen, daß die Filtration überhaupt keine Rolle bei den Vorgängen der Resorption und Sekretion spielt, und daß auch die Diffusion oder Osmose nicht allein ausreicht, um diese Vorgänge zu erklären. Besonders seit den grundlegenden Untersuchungen HEIDENHAINs[674] wissen wir, daß es der Lebensvorgang in der Zelle selbst ist, der beim Austausch gelöster Stoffe zwischen Zelle und Medium die bedeutendste Rolle spielt, denn die Diffusion allein ist nicht imstande, die Triebkraft zu erklären, mit der z. B. das Sekret vieler Drüsenzellen ausgestoßen wird, oder die beträchtliche Energie, mit der z. B. gewisse Nahrungsstoffe von seiten der Darmepithelzellen hereingerissen werden. In den letzten Jahren hat nun die Erkenntnis der Tatsache, daß die Protoplasmaoberflächen die Eigenschaften semipermeabler Membranen besitzen, einen wesentlichen Fortschritt in dem Verständnis der Vorgänge des Stoffaustausches zwischen Zelle und Medium angebahnt. Wie wir bereits an anderer Stelle[675] sahen, haben die semipermeablen Membranen die Eigentümlichkeit, die Diffusion von Stoffen so abzuändern, daß sie nicht mehr einfach den Diffusionsgesetzen folgt, sondern einer gewissen Elektion unterliegt. Die semipermeablen Membranen lassen gewisse diffusible Stoffe hindurch, andere nicht. Dazu kommt noch, daß dieses Elektionsvermögen nicht nur bei verschiedenen Protoplasmaoberflächen verschieden ist, sondern sich auch bei der gleichen Protoplasmaoberfläche unter verschiedenen Bedingungen ändern kann. Auf diese Weise wird der Prozeß des Stoffaustausches viel komplizierter als wir es früher geglaubt haben und es läßt sich ein allgemeines Gesetz für alle lebendigen Zellen nur soweit formulieren, als der Stoffaustausch zwischen Zelle und Medium überall beruht einerseits auf Diffusionsvorgängen, die durch die spezifischen Eigenschaften der semipermeablen Zelloberflächen elektiv beeinflußt werden und andererseits auf den chemischen Umsetzungen in der Zelle.
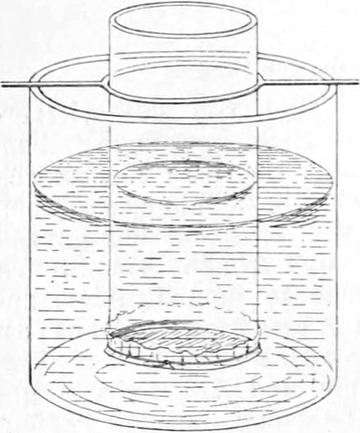
Fig. 286.
Dialysator
.
Unter Diffusion oder Osmose versteht man bekanntlich die Tatsache, daß sich zwei verschiedene Gase oder Flüssigkeiten, die miteinander mischbar sind, von selbst zu einem gleichartigen Gemenge mischen, wenn sie miteinander in Berührung gebracht werden. Wir haben diesen Vorgang bereits oben kennen gelernt. Erinnern wir uns wieder an die dort beschriebenen Tatsachen und an die elektiven Eigenschaften semipermeabler Membranen (vergl. p. 134 ff.), so können wir uns an einer einfachen Dialysevorrichtung (Fig. 286) die große Bedeutung klar machen, die der Chemismus der Zelle bei bestehender Diffusion oder Osmose besitzt. Haben wir in dem äußeren Gefäß des Dialysators eine diffusible Salzlösung, in dem inneren Gefäß dagegen eine reichliche Menge der Lösung eines Stoffes, der nicht durch die Membran diffundiert, etwa eines kolloiden Stoffes, so wird aus der Lösung des großen Gefäßes in die Flüssigkeit des Zylinders eine bestimmte Menge Salz hineindiffundieren, während vom Zylinder keine Substanz in das größere Gefäß übertreten kann. Stellen wir uns nun vor, daß die Substanz im Zylinder mit dem Salz eine nicht diffusible Verbindung bildet, so wird das in den inneren Zylinder hineindiffundierende Salz hier sofort aus dem Diffusionsakt ausgeschaltet. Würde ferner die so entstandene chemische Verbindung kontinuierlich in einfache diffusible Stoffe ganz anderer Art zerfallen, die durch Diffusion wieder nach außen hin abtreten, so würde immer neue Salzlösung aus dem äußeren Gefäß in den inneren Zylinder hineindiffundieren und die Salzlösung im großen Gefäß immer dünner und dünner werden, bis schließlich alles Salz in den Zylinder hineindiffundiert, gebunden und entfernt wäre.
Ein solcher Fall ist realisiert bei dem Austausch gasförmiger und gelöster Stoffe zwischen dem Medium und der lebendigen Substanz. Die lebendige Substanz ist mischbar mit den gasförmigen und gelösten Nahrungsstoffen und sie hat chemische Affinität zu ihnen. Die Protoplasmaoberfläche vertritt die Membran des inneren Zylinders, der Zellinhalt den Inhalt des Zylinders, und die gasförmigen oder gelösten Stoffe vertreten die Stelle der Salzlösung des äußeren Gefäßes. Diese Stoffe müssen diffusibel sein, soll überhaupt eine Aufnahme stattfinden: dagegen kann die lebendige Substanz nicht durch die Zellmembran diffundieren, da ja die Eiweißkörper etc. zu den sogenannten „Kolloidsubstanzen“ gehören. Es werden also die Nahrungsstoffe in die Zelle eintreten, die lebendige Substanz aber nicht austreten können. Da indessen die lebendige Substanz chemische Affinität zu den Nahrungsstoffen hat, muß sie dieselben gleich nach ihrem Eintritt in die Zelle binden. Gleichzeitig zerfällt aber dauernd die lebendige Substanz, gibt die einfachen diffusiblen Zerfallsprodukte nach außen ab und bildet durch den Assimilationsakt mit Hilfe der von außen aufgenommenen diffusiblen Nahrungsstoffe synthetisch selbst wieder komplizierte kolloidale, d. h. nicht diffusible Verbindungen, die wieder demselben Schicksal verfallen usf. So werden die aufgenommenen Nahrungsstoffe immer wieder verbraucht, so daß immer wieder neue Massen in die Zelle hineindiffundieren müssen, und so werden die diffusiblen Zerfallsprodukte des Stoffwechsels immer wieder nach außen hin abgegeben. Stellen wir uns also vor, eine lebendige Zelle läge in einem Medium, das Nährstoffe enthält, also etwa eine Bakterienzelle läge in einer Nährflüssigkeit, so müssen auf Grund der Osmose und des Chemismus der Zelle die Stoffe der Nährflüssigkeit, soweit sie die semipermeable Protoplasmaoberfläche passieren können, durch die Zellwand hindurch in die Zellsubstanz und umgekehrt die Stoffe der Zellsubstanz, welche die Zellwand passieren können, aus der Zelle in die Nährflüssigkeit treten. Dieser Austausch müßte so lange dauern, bis ein Ausgleich der transportablen Stoffe zwischen Zellinhalt und Medium eingetreten wäre. Dann müßte der Stoffwechsel aufhören. Allein dieser Zustand tritt in der lebendigen Zelle niemals ein, da wir in der lebendigen Substanz Verbindungen haben, die fortwährend zerfallen und sich von neuem aufbauen. Es kann zwischen der lebendigen Zelle und dem Medium niemals zu einem endgültigen Ausgleich der transportablen Stoffe kommen, weil einerseits die Stoffe, welche die Zelle vom Medium aufnimmt, immer gleich wieder verbraucht und in andere Verbindungen umgesetzt werden, und weil anderseits die Stoffe, welche die Zelle an das Medium abgibt, immer wieder in neuen Mengen gebildet werden. Es muß daher der Austausch zwischen Zelle und Medium so lange fortdauern, wie die Zelle einerseits noch in genügender Menge Nährstoffe aus dem Medium aufnehmen und anderseits in genügendem Maße Exkretstoffe an das Medium abgeben kann. Ist aber die Masse des umgebenden Mediums eine begrenzte, so muß die Zelle nach einiger Zeit zugrunde gehen, und zwar in dem Moment, in dem entweder die Menge der darin enthaltenen Nährstoffe verbraucht ist, oder indem das Medium schon so mit Exkretstoffen gesättigt ist, daß die Abgabe derselben von seiten der Zelle vermindert oder aufgehoben ist. Beide Fälle sind sehr leicht in Bakterienkulturen experimentell zu erzeugen. Die Bakterien sterben entweder an Nahrungsmangel oder an der Anhäufung ihrer eigenen Stoffwechselprodukte, weil der osmotische Stoffaustausch zwischen Bakterienzelle und Nährflüssigkeit durch allmählichen Ausgleich der Stoffe zwischen Zelle und Medium schließlich aufhört. Auch die Ermüdungsvorgänge, die durch Anhäufung von lähmenden Stoffwechselprodukten bedingt sind, liefern ein Beispiel für diese Verhältnisse.
In manchen Fällen wird aber der Mechanismus des Stoffaustausches zwischen Zelle und Medium noch etwas komplizierter. Wenn nämlich die Nährstoffe im umgebenden Medium nicht in diffusibler Form vorhanden sind, d. h. wenn sie entweder geformt sind oder so große Moleküle haben, daß sie die Poren der Zellwand nicht passieren können, dann müssen sie erst löslich und diffusibel gemacht werden, ehe sie die geschlossene Zelloberfläche passieren können. Das geschieht durch die Wirkung der Enzyme, welche die Zelle produziert und in manchen Fällen nach außen abgibt. In Berührung mit diesen Enzymen werden z. B. die polymeren Moleküle des Eiweißes, des Leims, der Stärke, des Fettes etc., sowie die geformten Massen dieser Stoffe gespalten und in Lösung gebracht und können nunmehr durch die Zellwand ins Innere der Zelle hineindiffundieren. Gerade bei Bakterienzellen kann man auch diesen Vorgang sehr gut verfolgen. Bringen wir z. B. eine Bakterienzelle auf eine mit fester Nährgelatine bedeckte Glasplatte, so beginnt die Zelle allmählich die Gelatine in ihrer Umgebung zu verflüssigen, d. h. die festen Stoffe in Lösung zu bringen, und aus dem so entstehenden Flüssigkeitstropfen, der die Bakterienzelle umgibt, können die gelösten Nährstoffe in die Zelle hineindiffundieren.
Bei membranlosen Zellen endlich mit nackter Protoplasmaoberfläche ist eine extrazellulare Verdauung nicht erforderlich, weil ja hier die Nahrungsstoffe, selbst wenn sie nicht diffusibel sind, ohne weiteres mit der Oberfläche des Protoplasmas in chemische Beziehung treten können.
Diese Ueberlegungen lassen es uns mechanisch im wesentlichen begreifen, wie sich die Resorption und Sekretion an der lebendigen Zelle fortwährend von selbst vollziehen kann. Auch die hohen Energiewerte, die sowohl die Resorption als die Sekretion erzielen kann, werden verständlich, wenn wir den Chemismus der lebendigen Zelle genügend berücksichtigen; denn findet in einer Zelle ein sehr lebhafter Stoffumsatz statt, dann ist es ohne weiteres klar, daß die umgesetzte chemische Energie in der Resorption wie in der Sekretion zu ganz beträchtlichen Leistungen führen kann. Immerhin bleiben im speziellen Falle noch genug Rätsel übrig, deren Beantwortung aber an eine andere Stelle gehört.
Liegen dem Austausch gelöster Stoffe zwischen Zelle und Medium vermutlich in allen Fällen die gleichen Prinzipien zugrunde, so beruht dagegen die Mechanik des Austausches geformter Stoffe in den einzelnen Fällen auf sehr verschiedenartigen Grundlagen. Allen Fällen des Austausches geformter Stoffe ist nur gemeinsam, daß dieser Austausch lediglich durch Bewegungen der betreffenden Zelle vermittelt wird, aber das Zustandekommen dieser Bewegungen kann in den verschiedenen Fällen auf sehr verschiedene Weise durch die Einwirkung der Nahrung bedingt sein. Wir finden die Aufnahme und Abgabe geformter Stoffe nur wenig verbreitet, und zwar nur einerseits bei nackten Protoplasmamassen, wie Rhizopoden, Leukocyten etc., und anderseits bei Infusorien, soweit sie eine besondere Mundöffnung besitzen.
Bei vielen Infusorien, wie z. B. Stentor, Vorticella, also namentlich bei solchen, die eine festsitzende Lebensweise führen, scheint die Nahrungsaufnahme lediglich dem Zufall überlassen zu sein, der gelegentlich kleine, freischwimmende Nahrungspartikel, wie Algenzellen, Schwärmsporen, Bakterien etc., in den Bereich des charybdisähnlichen Strudels führt, der durch den Schlag der Peristomwimperreihe erzeugt wird. Dieser Strudel wird in seiner Richtung durch Veränderungen im Wimperschlag in ganz bestimmter Weise beeinflußt und zeitweilig so geregelt, daß er direkt in die Mundöffnung des Zellkörpers leitet. Freischwimmende Infusorien und die meisten nackten Protoplasmamassen dagegen suchen die geformte Nahrung selbst auf. Dabei werden sie entweder durch chemische Reize, die von den Nahrungsmassen durch Diffusion gewisser Stoffe ausgehen, aus der Ferne herbeigelockt, oder sie werden bei direkter Berührung mit den Nahrungsmassen durch mechanische Reizung zur Aufnahme veranlaßt. Im ersteren Falle ist das Aufsuchen und die Aufnahme der Nahrung eine Form von positiver Chemotaxis, indem die Zelle sich nach der chemischen Reizquelle hin bewegt, und ihr Protoplasma in engste Beziehung zu den betreffenden Stoffen bringt, im letzteren Falle eine Form der positiven Thigmotaxis, indem die Zelle die Berührung mit dem betreffenden Nahrungskörper möglichst ausdehnt und ihn mit ihrem Protoplasma umfließt. Sehr häufig sind beide Momente vereinigt. Immer aber wird der Nahrungsballen vom Protoplasma allseitig umflossen, wenn er mit ihm in Berührung getreten ist, sei es an der Oberfläche des nackten Protoplasmakörpers, sei es im Grunde der Zellmundöffnung eines Infusors. Diese Umfließung erklärt sich in vielen Fällen aus der expansorischen Wirkung, die der Reiz des Nahrungsballens auf das Protoplasma ausübt: denn wenn sich die Oberfläche des Protoplasmas um den Nahrungsballen ringsherum vorwölbt, muß derselbe schließlich vom Protoplasma umflossen sein. In vielen Fällen dagegen scheinen lediglich die mechanischen Beziehungen der Oberflächen des Protoplasmas einerseits und des aufzunehmenden Nahrungskörpers anderseits zu genügen, um einen Import des letzteren in das Protoplasma herbeizuführen. In dieser Hinsicht sind die ausgezeichneten Untersuchungen von RHUMBLER[676] interessant, die dieser Forscher vor mehreren Jahren über verschiedene Momente aus der Mechanik des Zelllebens angestellt hat. So fand RHUMBLER beispielsweise, daß Chloroformtropfen, welche in Wasser liegen, Schellackfäden, die mit ihnen in Berührung kommen, von selbst umfließen, genau wie eine Amöbe ihre Nahrung mit dem Protoplasmakörper umfließt. Hier sind es lediglich die molekularen Beziehungen der Adhäsion zwischen Chloroform und Schellack, die zur Aufnahme des letzteren in den Chloroformtropfen führen. Die Aufnahme von geformter Nahrung findet also ihre Erklärung teils in dem Mechanismus der chemotaktischen und thigmotaktischen Reizwirkungen, den wir bereits an anderer Stelle genauer kennen lernten[677], teils in den molekularen Oberflächenbeziehungen der Zelle zu den Nahrungsstoffen.
Wie die Abgabe geformter Stoffe stattfindet, ist noch wenig untersucht. Es scheint, als ob sie vielfach dem Zufall überlassen ist. Wenigstens macht es bei der Amöbe den Eindruck. Die geformten Stoffe liegen in der Regel in Vakuolen, und wenn einmal die Vakuole bei der fortwährenden Bewegung des Protoplasmas dicht an die Körperoberfläche zu liegen kommt, platzt gelegentlich die dünne Wand, die sie vom umgebenden Medium trennt, und der Inhalt wird frei. Vielleicht aber sind zu diesem Platzen der Vakuolenwand auch irgendwelche Reize von seiten des Exkretballens notwendig. Ferner spielen auch hier die Oberflächenbeziehungen zwischen dem Protoplasma und dem Fremdkörper eine große Rolle. So fand RHUMBLER (l. c.), daß Chloroformtropfen in Wasser Glasstückchen, die man in sie hineingebracht hat, von selbst an das Wasser abgeben, weil einerseits die Kohäsion der Chloroformteile untereinander und anderseits auch die Adhäsion zwischen Glas und Wasser viel größer ist als die Adhäsion zwischen Glas und Chloroform. Eine Schwierigkeit für die Annahme einer lediglich durch die Adhäsions- und Kohäsionsbeziehungen bedingten Aufnahme und Abgabe von festen Stoffen liegt scheinbar in der Tatsache, daß ein Flüssigkeitstropfen, der eine bestimmte Art von Fremdkörpern in sich hineinzieht, dieselben nie wieder nach außen abgibt, während doch die Amöbe erst die Nahrungskörper aufnimmt und später auch wieder nach außen abstößt. Allein RHUMBLER macht mit Recht darauf aufmerksam, daß der Nahrungskörper, der von der Amöbe aufgenommen ist, sich ja im Protoplasma chemisch verändert und daher nach der Verdauung eine ganz andere Beschaffenheit besitzt als vorher. Unter Berücksichtigung dieses Umstandes konnte RHUMBLER auch künstlich eine Versuchsanordnung herstellen, bei der ein fester Körper erst von einem Flüssigkeitstropfen aufgenommen und später wieder abgegeben wurde. Er wählte wieder Chloroformtropfen in Wasser und brachte sie in Berührung mit feinen Glasfäden, die mit einer dünnen Schicht von Schellack überzogen waren. Chloroform nimmt Schellack auf. Daher wurden die Fäden in den Tropfen hineingezogen und von demselben umflossen (Fig. 287), genau wie ein Bakterienfaden von einem Leukocyten (vergl. Fig. 55, p. 172) oder wie ein Algenfaden von einer Amöbe. In Chloroform ist Schellack löslich. Daher wurde der Glasfaden nach kurzer Zeit von seinem Schellacküberzug befreit. Reines Glas wird aber von Chloroform in Wasser ausgestoßen. Infolgedessen gab der Chloroformtropfen die von ihrer Schellackhülle befreiten Glasfäden wieder nach außen ab (Fig. 287), wie eine Amöbe die unverdauten Zellulosehüllen eines Algenfadens.
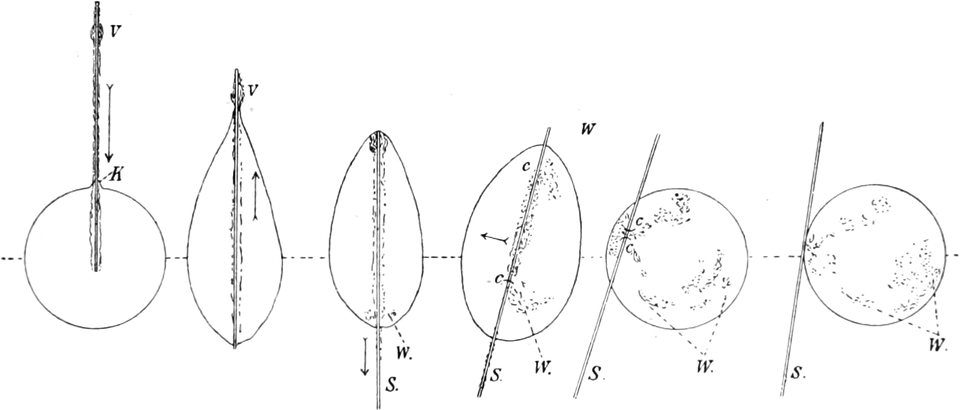
Fig. 287.
Ein überschellackter Glasfaden wird von einem Chloroformtropfen aufgenommen und dann, nachdem er seiner Schellackrinde entkleidet ist, wieder ausgestoßen
. Nach R
HUMBLER
.
Als einen ganz wunderbaren Vorgang, der einer mechanischen Erklärung besondere Schwierigkeiten mache, hat man mehrfach die sogenannte Nahrungsauswahl von seiten lebendiger Zellen hingestellt, d. h. die Tatsache, daß die Zellen unter den ihnen zur Verfügung stehenden Stoffen nur ganz bestimmte Stoffe in sich aufnehmen[678]. So hat BUNGE[679] von dem Aufsuchen der Spirogyrafäden seitens der Vampyrella Spirogyrae gesagt: „An eine chemische Erklärung dieser Erscheinungen ist vorläufig gar nicht zu denken.“ Weshalb aber daran nicht zu denken sein soll, ist eigentlich nicht recht verständlich. Schält man aus diesen Vorgängen das Prinzip heraus, das ihnen zugrunde liegt, d. h. die Tatsache, daß jede Zelle nur ganz bestimmte Stoffe in sich aufnimmt und andere nicht, so gibt es im Gegenteil eigentlich kaum etwas, was selbstverständlicher wäre. Jede Zelle hat ihre charakteristische Zusammensetzung aus ganz bestimmten Stoffen und hat ihren ganz eigentümlichen Stoffwechsel. Ist es da unverständlich, daß nur diejenigen Stoffe aus dem Medium in den Stoffwechselkreislauf der Zelle hineingezogen werden, die chemische Beziehungen zu den Stoffen des Zellkörpers haben und zur Unterhaltung des Stoffwechsels nötig sind, während die anderen, die keine solchen Beziehungen zur lebendigen Substanz der Zelle besitzen, die für die Zelle indifferent sind, nicht aufgenommen und bei freier Ortsbeweglichkeit nicht aufgesucht werden? Das Prinzip, das diesem Vorgange zugrunde liegt, ist offenbar kein anderes als das, welches die ganze Welt der Atome und Moleküle überhaupt beherrscht, das Prinzip der Affinität. Daß eine Vampyrella Spirogyrae nur Spirogyrafäden aufsucht, umfließt und verdaut und andere Körper nicht, ist sicherlich nicht wunderbarer als daß sich ein Phosphoratom mit einem Sauerstoffatom sehr leicht verbindet, mit einem Stickstoffatom dagegen nicht, obwohl ihm in der Luft beide zur Verfügung stehen oder daß ein ranziger Oeltropfen, wie GAD[680] gezeigt hat, auf einer alkalischen Flüssigkeit amöboide Fortsätze aussendet und das Alkali zur Seifenbildung benutzt, auf einer saueren dagegen in Ruhe bleibt. Das Benehmen der Vampyrella steht aber auch in Wirklichkeit gar nicht isoliert da; vielmehr zeigt jede lebendige Zelle das gleiche Verhalten. Im menschlichen Körper z. B. nimmt jede Gewebezelle aus der gemeinsamen Nährflüssigkeit, dem Blute, nur ganz bestimmte Stoffe in sich auf, andere nicht, wie aus der Tatsache hervorgeht, daß Drüsen-, Muskel-, Knorpelzellen etc. auch ganz verschiedene und nur für sie charakteristische Stoffe produzieren. In dieser Beziehung verhält sich die Zelle, wie bereits HAECKEL[681] betont hat, genau wie ein Kristall, etwa von Alaun, der aus einer zahlreiche Salze in Lösung enthaltenden Mutterlauge immer nur Alaunmoleküle auswählt, um sie zu seinem Wachstum oder, wenn man ihn verletzt hat, zu seiner Regeneration zu benutzen. So ist das mystische Dunkel, das man künstlich um die sogenannte Auswahl von Nahrungsstoffen seitens der einzelnen Zelle zu verbreiten gesucht hat, in Wirklichkeit gar nicht vorhanden. Was man in anthropomorphischer Uebertragung eine „Nahrungsauswahl“ von seiten der Zelle genannt hat, ist schlechterdings eine notwendige Konsequenz aus der Tatsache, daß jede Zelle ihre eigene spezifische Zusammensetzung der lebendigen Substanz und ihren eigenen charakteristischen Stoffwechsel hat.
Ebenfalls in rein mechanischer Weise erklärt sich die scheinbare Auswahl von Gehäusebaumaterial bei Difflugien und verwandten Organismen[682]. Auch hier hat man an allerlei wunderbare Fähigkeiten der Zelle gedacht, und auch hier liegen die Bedingungen für die scheinbar so merkwürdigen Vorgänge in einfachen mechanischen Verhältnissen. Es läßt sich nämlich bei genauerer Untersuchung einzelner Fälle nachweisen, daß hier gar keine wirkliche Auswahl vorliegt, in dem Sinne, wie es bei der Nahrungsaufnahme der oben genannten Zellen der Fall ist. Es hängt vielmehr die Tatsache, daß die Formen eines und desselben Standortes nur ein bestimmtes Material zum Gehäusebau benutzen, vielfach nur von dem Umstande ab, daß ihnen an dem betreffenden Standort nur dieses eine Material zur Verfügung steht. Untersucht man z. B. die Wohnstätte einer Form, die ihr Gehäuse nur aus Schlamm oder aus selbst ausgeschiedenen Stoffen baut, so findet man, daß hier andere Materialien, etwa Diatomeenpanzer oder Sandkörner, vollständig fehlen. Gibt man aber einer solchen Form die Möglichkeit, auch anderes Material zu bekommen, indem man in das Kulturgefäß, in dem man sie hält, sehr fein pulverisierten Sand oder, noch besser, sehr fein zermahlenen Staub von farbigem Glase schüttet, so findet man die durch Fortpflanzung neu entstandenen Individuen mit einem zierlichen Gehäuse von farbigen Glassplittern umgeben. Auch der Umstand, daß einige Formen nur kleine Sandkörnchen, andere vorwiegend größere in ihrem Gehäuse haben, ist zum Teil auf die Beschaffenheit des ihnen zu Gebote stehenden Materials zurückzuführen, zum Teil aber auch auf andere rein äußerliche Verhältnisse, wie z. B. auf die Enge der Gehäusemündungen mancher Formen, die es nicht gestattet, daß der Protoplasmakörper größere Sandkörnchen hindurchzieht. Es kann demnach beim Gehäusebau der Difflugien von einer wirklichen Auswahl des Baumaterials im anthropomorphen Sinne nicht die Rede sein.
Aber auch die scheinbar so kunstvolle und geschickte Bautätigkeit der Difflugien verliert bei genauerer Betrachtung alles Wunderbare, das man in ihr sehen zu müssen geglaubt hat. Bei der Zellteilung der Difflugien finden im Protoplasma sehr tiefgehende chemische Veränderungen und mechanische Bewegungen statt. Dabei werden die im Protoplasma produzierten und angehäuften Körner und Tropfen des organischen Schalenbaumaterials an die Oberfläche des Zellkörpers gebracht und lagern sich hier nach einfachen mechanischen Gesetzen aneinander[683]. Mit ihnen wird auch das von außen her aufgenommene Schalenbaumaterial (Sand, Diatomeen etc.), wenn solches im Körper vorhanden ist, an die Oberfläche ausgeschieden und durch das organische Bindemittel verkittet. So entsteht die Schale der neuen Teilhälfte einer Difflugia, die sich ganz genau der Gestalt des Protoplasmakörpers anpaßt, der sich aus der alten Schale herauswölbt. RHUMBLER[684], dem wir so viele künstliche Nachahmungen von Lebensäußerungen der Zelle verdanken, hat auch den Gehäusebau der Difflugien mit einfachen Stoffen nachgeahmt und gezeigt, daß sich z. B. Chloroformtropfen und Oeltropfen aus Quarzkörnern, Glassplittern, Schellack- und Zinnoberteilchen etc., die man ihnen beimischt, in Wasser auf Grund der Gesetze der Adhäsion und Kohäsion „Gehäuse bauen“, die von denen der Difflugien schlechterdings nicht zu unterscheiden sind (Fig. 288 c, d, e). Wir sehen also, daß auch in den scheinbar so wunderbaren und komplizierten Tätigkeiten der Zelle, wie sie in der Aufnahme und Verwertung fester Stoffe zum Ausdruck kommen, keinerlei Momente enthalten sind, die über eine mechanische Erklärung hinausgingen.
Was endlich die intermediären Vorgänge des Stoffwechsels, die Assimilation und Dissimilation betrifft, so ist deren allgemeines mechanisches Verständnis bereits oben in den Abschnitten über den Lebensvorgang entwickelt worden. Inwieweit aber die einzelnen Teile der Zelle mit ihren chemischen Prozessen daran beteiligt sind, entzieht sich bei der mangelnden Kenntnis der speziellen Glieder der Stoffwechselkette vorläufig noch unserer Kenntnis. Darüber aber kann selbstverständlich kein Zweifel bestehen, daß den Vorgängen der Assimilation und Dissimilation ebenfalls keine anderen Faktoren zugrunde liegen als mechanische. Ein vollständiges Analogon aus der anorganischen Natur für den Stoffwechsel der Organismen haben wir ja schon früher in den Vorgängen bei der Fabrikation der englischen Schwefelsäure kennen gelernt und die fundamentale Tatsache der Selbststeuerung des Stoffwechsels nach einer Störung des Stoffwechselgleichgewichts durch Reize hat ihr einfaches mechanisches Paradigma in der Erhaltung chemischer Gleichgewichtszustände auf Grund des Massenwirkungsgesetzes gefunden. Uebrigens verdient an dieser Stelle besondere Erwähnung der geistvolle Versuch ZEHENDERs[685], für die Vorgänge in der anorganischen wie in der organischen Natur aus gewissen allgemeinen physikalisch-chemischen Voraussetzungen auf synthetischem Wege ein einheitliches Verständnis zu gewinnen. In origineller Weise schlägt ZEHENDER den umgekehrten Weg ein, wie die zergliedernde und analysierende Forschung, und erörtert von wenigen Prämissen ausgehend, die verschiedenen mechanischen Möglichkeiten, nach denen man sich vor allem die Lebensäußerungen in konsequenter Weise aus den vorausgesetzten Grundeigenschaften des Stoffes resultierend denken kann. Besonders verdienen seine Erörterungen über den Assimilations- und Dissimilationsvorgang Beachtung. ZEHENDERs Versuch ist besonders deshalb bemerkenswert, weil er, von einem ganz anderen Wege ausgehend, zu dem gleichen Ergebnis führt, wie die physiologische Forschung, nämlich zu einem rein mechanischen Verständnis der Lebensäußerungen.
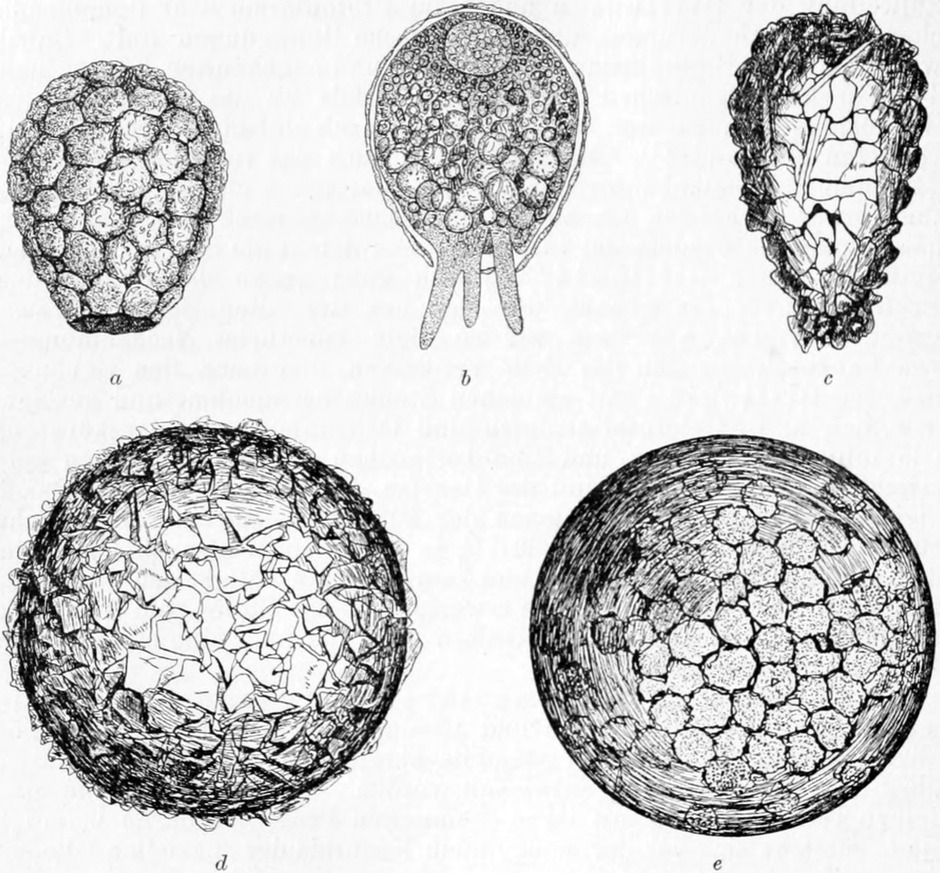
Fig. 288.
Gehäuseformen
(vergl. auch Fig. 60, p. 177),
a
Gehäuse einer Difflugia aus selbstproduziertem organischen Schalenmaterial,
b
Längsschnitt durch den Protoplasmakörper einer Difflugia mit den noch weichen Tröpfchen des organischen Gehäusebaumaterials im Innern,
c
Gehäuse eines Oeltropfens aus Quarzkörnern bestehend,
d
Gehäuse eines Chloroformtropfens aus Glassplittern gebaut,
e
Gehäuse eines Gemischtropfens von Chloroform, Provenceröl und alkoholischer Schellacklösung, der mit Zinnober und Glassplittern verrieben ist (
c
,
d
,
e
nach R
HUMBLER
).
Nach alledem lassen sich also die Vorgänge des Stoffaustausches der Zelle sämtlich aus chemischen und physikalischen Verhältnissen heraus, wie sie auch in der anorganischen Natur gefunden werden, verstehen, und wenn wir auch bisher außer stande sind, die speziellen Glieder des Stoffwechsels im einzelnen Falle bis in ihre Einzelheiten hinein zu verfolgen, so gewinnen wir doch die Gewißheit, daß der gesamte Stoffwechsel rein mechanisch zustande kommt, und daß wir nirgends auf Tatsachen stoßen, die in Wahrheit einer mechanischen Erklärung unzugänglich sind. Die eiserne Schlußfolgerung, daß alles, was aus den gleichen Elementarstoffen besteht, auch den allgemeinen Gesetzen dieser Elementarbestandteile gehorchen muß, kann selbstverständlich auch in der organischen Welt nirgends eine Ausnahme erleiden.
2. Die Formbildungs-Mechanik der Zelle.
Obwohl wir bei dem jetzigen Stande unserer Kenntnisse von den Vorgängen in der Zelle nicht wissen, mit welchen speziellen Leistungen sich die einzelnen Bestandteile der Zelle am Gesamtstoffwechsel derselben beteiligen, mit welchen chemischen Prozessen Kern und Protoplasma samt ihren speziellen Inhaltsmassen in die Geschichte des Biogens verwebt sind, so genügen doch unsere bisherigen Erfahrungen über die allgemeinen Stoffwechselverhältnisse in der Zelle, um zu erkennen, daß sich auch die Formbildungsvorgänge, d. h. die Tatsachen des Wachstums und der Fortpflanzung, der Entwicklung und der Vererbung, als mechanische Konsequenz aus diesen Stoffwechselverhältnissen herleiten lassen.
a) Das Wachstum als Grundvorgang der Formbildung.
Das Wachstum bildet den Grundprozeß der organischen Formbildung, denn das Wachstum der Zelle ist nicht nur der einfachste Fall der Formbildung überhaupt, sondern es enthält zugleich die inneren Bedingungen für die komplizierten Vorgänge der Fortpflanzung und Entwicklung der Zelle, wie die folgende Betrachtung alsbald ergeben wird. Den Wachstumsmodus der lebendigen Substanz haben wir bereits an einer andern Stelle[686] berührt. Wir wissen, daß wir in der lebendigen Substanz Moleküle haben, die eine außerordentliche Neigung zur Polymerisierung besitzen, d. h. Moleküle, die unter gegebenen Bedingungen durch weiter und weiter fortschreitende Anlagerung gleichartiger Atomgruppen sich vergrößern und Ketten von gleichen Gliedern bilden. In den nativen Eiweißkörpern haben wir solche polymeren Moleküle der lebendigen Substanz kennen gelernt, und so ist es schon von vornherein wahrscheinlich, daß die Biogene diese Eigenschaft ebenfalls besitzen werden. Wäre aber nicht schon aus diesem Grunde die Polymerie des Biogenmoleküls mehr als wahrscheinlich, so würden wir notwendig zu ihrer Annahme gezwungen durch die Tatsache des Wachstums. Das Wachstum der lebendigen Substanz selbst, d. h. die Vermehrung der lebendigen Substanz im Verein mit dem Umstande, daß neue lebendige Substanz nur dort entsteht, wo bereits lebendige Substanz vorhanden ist, verlangt als Substrat unbedingt ein Molekül, das durch Polymerisierung sich vergrößert. Wir können uns das Wachstum der lebendigen Substanz nur vorstellen, indem wir uns ein Biogenmolekül denken, das aus den Stoffen der Umgebung (Nahrungsstoffen) nach und nach gleichartige Atomgruppen an sich anlagert, die ihrerseits in derselben Weise fortfahren, aus der Umgebung bestimmte Atome und Gruppen an sich zu ziehen und wieder in der gleichen Lagerung zu binden etc. Dabei brauchen die einzelnen Glieder dieser polymeren Ketten nicht dauernd aneinander hängen zu bleiben und so, wie PFLÜGER annimmt, zur Bildung von „Riesenmolekülen“ zu führen. Es scheint vielmehr im Hinblick auf mancherlei Tatsachen richtiger anzunehmen, daß diese Ketten hier und dort immer wieder in einzelne Grundmoleküle auseinanderbrechen oder auseinanderreißen, indem sich die getrennten Affinitäten in anderer Weise schließen[687]. Daß endlich dieser Neubildungsprozeß von Biogenmolekülen dem Massenwirkungsgesetz unterworfen sein muß, daß also zwischen der Menge der zur Verfügung stehenden Bausteine, wie sie durch die Nahrungszufuhr geliefert und durch die präparatorischen Prozesse des Assimilationsvorgangs in die geeignete Form übergeführt werden, einerseits und der Menge der neugebildeten Biogenmoleküle andererseits ein chemischer Gleichgewichtszustand bestehen muß, welcher der Selbststeuerung unterliegt, haben wir uns oben bereits an dem paradigmatischen Beispiel der Esterbildung[688] klar gemacht. Der Vorgang, den wir uns dort an einem einfachen Substrat veranschaulichten, verläuft freilich in der Zelle, deren lebendige Substanz und deren Stoffwechsel bereits sehr weit differenziert ist, bedeutend komplizierter. In der Zelle sind mehr oder weniger eng an der Bildung und dem Wachstum der Biogenmoleküle sowohl die Substanzen des Kerns als des Protoplasmas mit allen ihren speziellen Differenzierungen beteiligt. Allein es ist bei diesem engen Ineinandergreifen und bei dieser engen Abhängigkeit der einzelnen Bestandteile der Zelle voneinander sehr verständlich, daß, wenn z. B. die Biogenmoleküle des Protoplasmas durch Polymerisierung wachsen, dieses nur möglich ist, wenn zugleich auch andere Bestandteile des Protoplasmas oder des Kerns in einem bestimmten Maße zunehmen, mit anderen Worten, es wird nicht bloß eine einzelne Substanz des Protoplasmas oder Kerns allein wachsen, sondern ihr Wachstum wird begleitet sein von dem Wachstum anderer Substanzen, und es wird bestimmt sein durch die Menge des Materials, das zum Aufbau erforderlich ist.
Es ist von Wichtigkeit, auf die Verhältnisse, die sich bei dieser engen Korrelation der einzelnen Zellteile durch das Wachstum entwickeln, etwas näher einzugehen. Denken wir uns zum Beispiel eine freilebende runde Zelle, die alle zu ihrem Leben notwendigen Stoffe in dem umgebenden Medium in genügendem Maße zur Verfügung hat, und nehmen wir an, daß diese Zelle wächst, so wird sich mit zunehmender Größe der Zelle das Verhältnis der Oberfläche zur Masse mehr und mehr verändern, und zwar wird nach bekannten mathematischen Gesetzen die Oberfläche gegenüber der Masse wachsen im Verhältnis des Quadrates zum Kubus. Mit anderen Worten: je kleiner die Zelle ist, um so größer ist die Oberfläche im Verhältnis zur Masse, und je mehr die Zelle wächst, um so weniger wächst die Oberfläche im Verhältnis zur Masse.
Diese einfache Tatsache ist aber von fundamentaler Bedeutung. Das wird sofort klar, wenn wir daran denken, daß die einzelnen Teile des Zellkörpers in innigen Stoffwechselbeziehungen untereinander und mit der Außenwelt stehen. Gegenüber den von außen aufgenommenen Nahrungsstoffen, sowie dem Sauerstoff wird sich, je mehr die Zelle wächst, um so mehr ein Mißverhältnis zwischen den äußeren und den inneren Schichten des Zellkörpers herausbilden, denn da die Oberfläche, durch die ja die Nahrung aufgenommen wird, sich in geringerem Maße vergrößert, als die Masse des Zellkörpers, so wird ein Zeitpunkt eintreten, an dem die aufgenommene Nahrung nicht mehr für den ganzen Zellkörper ausreicht, und die Folge davon muß sich in einer zu geringen Ernährung der inneren Zellschichten gegenüber den äußeren bemerkbar machen. Während in den äußeren Zellschichten die Ernährung schnell und reichlich erfolgt, geschieht sie in den tieferen Schichten langsamer und spärlicher. Das wird nicht bloß das Protoplasma treffen, sondern auch den Zellkern. Der Zellkern wird viel weniger Stoffe von außen empfangen, wenn die ihn umgebende Protoplasmaschicht dicker und dicker wird, als wenn sie nur dünn ist. Umgekehrt aber werden auch die äußeren Schichten der Zelle viel weniger reichlich mit Kernstoffen versorgt werden als die inneren. Kurz, der Stoffwechsel muß bei dem engen Ineinandergreifen der einzelnen Zellteile tiefgehende Veränderungen erfahren, die sich immer mehr steigern, je mehr die Zelle wächst. Der Stoffwechsel der Zelle ist daher, solange die Zelle stetig wächst, in keinem Zeitdifferential genau derselbe wie im vorhergehenden und wie im folgenden.
Diese zwingende Konsequenz aus der Tatsache des Wachstums enthält aber das Prinzip aller Entwicklung in sich, d. h. die Tatsache des Wachstums reicht bei den engen Stoffwechselbeziehungen, die zwischen den einzelnen Inhaltsbestandteilen der Zellen und des Mediums existieren, allein schon vollkommen aus, um notwendig zu Veränderungen zu führen, wie wir sie als „Entwicklung“ bezeichnen.
Zunächst ergibt sich aus diesen Verhältnissen, daß die Zelle eine bestimmte Größe nicht überschreiten kann, denn wenn die Störungen des Stoffwechsels, die durch das steigende Mißverhältnis zwischen den oberflächlicheren und den tieferen Schichten der Zelle entstehen, einen bestimmten Grad erreicht haben, kann die Zelle nicht mehr in dieser Form am Leben bleiben. So erklärt sich sehr einfach die ganz auffallende Tatsache, daß wir keine formbeständigen, massigen Zellen kennen, die größer wären als einige Millimeter; so lernen wir verstehen, wie es kommt, daß die Entwicklung großer Organismen nur möglich ist durch Anordnung der lebendigen Substanz zu einem Kongregat von einzelnen kleinen Zellen und unmöglich durch Anordnung der lebendigen Substanz zu einer einzigen Zelle, etwa von der Größe eines Menschen. Gleichzeitig ist aber auch verständlich, daß unter Umständen Zellen, deren Oberfläche bedeutend vergrößert ist im Verhältnis zur Masse, wie bei den flächenhaften Blättern der Caulerpa, oder Zellen, deren Protoplasma in fortwährender Zirkulation zwischen Oberfläche und Innerem begriffen ist, wie bei den Plasmodien der Myxomyceten, eine bedeutendere Größe erreichen können, namentlich wenn auch die Kernsubstanz durch Vervielfältigung eine beträchtliche Vergrößerung aufweist. In diesen Fällen kann sich eine Differenz zwischen den äußeren und den inneren Schichten des Zellkörpers nicht in dem Grade entwickeln, wie bei kompakten Zellen. Wo aber der Zellkörper eine kompakte Masse vorstellt, wo ferner eine lebhafte Strömung des Inhalts nach der Oberfläche fehlt, und wo schließlich nur ein Kern im Protoplasma vorhanden ist, da kann die Zelle eine bestimmte Größe nicht überschreiten. Es muß daher bei einer solchen Zelle an einem bestimmten Zeitpunkt des Wachstums eine Korrektur dieses Mißverhältnisses zwischen Masse und Oberfläche und der dadurch bedingten Stoffwechselstörungen eintreten, und eine solche haben wir in der Tat in der Fortpflanzung der Zelle durch Zellteilung.
Die Fortpflanzung der Zelle durch Teilung ist demnach lediglich als eine Folge des Wachstums zu betrachten, und mit Recht haben die Morphologen schon seit langer Zeit die Fortpflanzung als eine Fortsetzung des Wachstums, als ein „Wachstum über das individuelle Maß hinaus“ bezeichnet. Leider gehen die Ansichten über die spezielle Mechanik des Zellteilungsvorganges bisher noch sehr auseinander. Schon über Bedeutung und Herkunft der bei der Zellteilung auftretenden Strahlungen ist eine Einigung der Auffassungen noch nicht erzielt. Die Mehrzahl der Forscher hält allerdings in Anlehnung an die Untersuchungen von VAN BENEDEN[689] und BOVERI[690] die Strahlensysteme für einen Mechanismus der Zelle der durch Kontraktion der Fäden die Chromatinschleifen auseinander zieht; aber auch eine gerade entgegengesetzte Anschauung hat Vertreter gefunden, DRÜNER[691], BRAUS[692] und MEVES[693] glauben nämlich in den Strahlen Stemmfasern erblicken zu dürfen, die nicht durch Kontraktion, sondern durch Expansion in Wirkung treten; HOUSSAY[694], GIARDINA[695] und LEDUC (cf. weiter unten) halten die Strahlen für Diffusionsströme; H. E. ZIEGLER[696] schließlich ist der Ansicht, daß eine im Durchschnürungsäquator bei vielen Zellteilungen auftretende in Kontraktionsspannung befindliche plasmatische Zusammenhäufung die Durchteilung der Zelle bewirkt, und daß die Strahlenbildung bloß einen Begleitvorgang darstellt, der irgendwie mit der Entstehung des äquatorialen Kontraktionsringes in noch nicht analysierbarem Zusammenhang steht. Eine Kritik dieser und anderer Anschauungen findet man in den Arbeiten RHUMBLERs, dessen Untersuchungen am tiefsten in den Gegenstand eingedrungen sind.
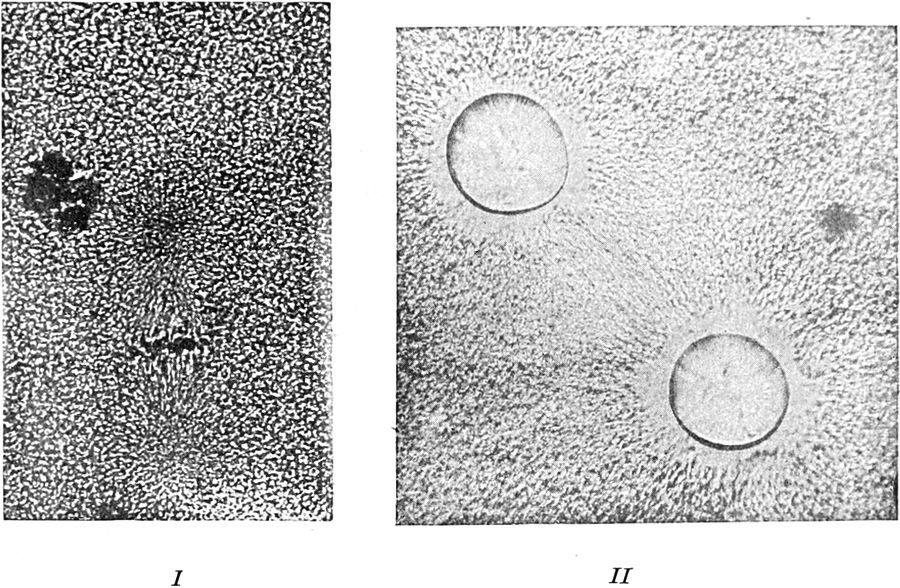
Fig. 289.
Photographische Aufnahme von Strahlungsfiguren
.
I
Kernstrahlungsfigur aus einem Cephalopodenembryo.
II
Strahlungsfigur um zwei Luftblasen in einem Gelatineschaum, der durch Chromsäure zum Gerinnen gebracht wurde. Nach Photographien von B
ÜTSCHLI
.
Schon vor längerer Zeit hat BÜTSCHLI[697] die Vorstellung ausgesprochen, daß die Strahlungsfigur, die sich bei der Kernteilung um das Zentrosom im Protoplasma bildet, ein Ausdruck von Diffusionsvorgängen sei, die zwischen dem Zentrosom und dem Protoplasma entstehen, und später hat BÜTSCHLI[698] gezeigt, daß beim Erkalten und Gerinnen warm auf eine Glasplatte gegossener wässeriger (wie die mikroskopische Untersuchung lehrt, schaumig strukturierter) Gelatinelösungen um Luftblasen herum durch die Zugwirkung der sich zusammenziehenden Luft Strahlungsfiguren entstehen, die denen der karyokinetischen Figur vollständig gleichen (Fig. 289). An diese Beobachtungen BÜTSCHLIs lassen sich RHUMBLERs[699] theoretische Ableitungen am besten anschließen. Die Strahlungserzeugung ist innerhalb des Wabenwerks der Zelle im Gegensatz zum Kleinerwerden der Luftblasen bei den künstlichen Gelatinespindeln mit einer recht augenfälligen Vergrößerung der die Zugwirkung hervorrufenden Zentrosomen verbunden. Zu dieser Zentrosomenvergrößerung ist unbedingt Substanzzufuhr, Substanzaufnahme aus dem Zellleib her, notwendig. RHUMBLER nimmt mit BÜTSCHLI an, daß die aufgenommene Substanz Wasser oder eine wässerige Lösung ist, die dem umgebenden plasmatischen Schaumsystem infolge eines starken Imbibitionsstrebens der Zentrosomen entzogen wird; es ist hierdurch zugleich erklärt, warum das den Sphären zunächst anliegende Protoplasma während der Zellteilung stärker lichtbrechend, dichter wird; es wird einfach durch den Wasserverlust kondensierter, vielleicht sogar in den festflüssigen Zustand der Gelbildung übergeführt[700]. Die Entziehung der wässerigen Flüssigkeit verändert aber die Oberflächenspannung in den plasmatischen Schaumwänden: die Oberflächenspannung der Wandflächen wird um so kleiner, je kondensierter die Schaumwandsubstanz durch ihre Flüssigkeitsabgabe an die Zentrosomen wird, denn aus QUINCKEs[701] Untersuchungen läßt sich entnehmen, daß die Oberflächenspannung eines Kolloids im allgemeinen mit seinem Konzentrationsgrade abnimmt. Die dem Zentrosom direkt anliegenden Schaumwände werden, da sie der Imbibitionskraft der Zentrosomen naturgemäß am meisten ausgesetzt sind, die geringste Oberflächenspannung besitzen, und die Oberflächenspannung in den Schaumwänden wird um so mehr steigen, je weiter ein Wandteil von dem Zentrosom entfernt liegt. Da nun das gesamte Wandsystem des Cytoplasmaschaumes eine kontinuierliche kohärente Masse darstellt, in welcher die Inhalte der Schaumkämmerchen die Rolle diskontinuierlicher Einlagerungen spielen, so muß die gradweise verschiedene Verteilung der Oberflächenspannung auf den Schaumwandflächen eine Bewegung der zähflüssigen Wandmasse zur Folge haben; die Wandmasse wird aus den weiter abliegenden Wänden, durch den hier stärkeren Oberflächendruck der Wände nach den dem Zentrosom näherliegenden Wandteilen hingedrückt, oder, was dasselbe heißt, die verdichtete, dem Zentrosom anliegende Schaumwandsubstanz, die sogenannte Sphäre, zieht die weniger dichte Wandsubstanz aus den Schaumwänden der peripherischen Zellgegenden an sich heran. Sobald sich aber auf diese Weise das Hyaloplasma der Wabenwände um die Sphären herum zusammenzieht[702], muß (wegen der Inkompressibilität der Flüssigkeiten) notwendigerweise Alveoleninhalt in entgegengesetzter Richtung entweichen; man kann demnach sagen: die Sphäre attrahiert Schaumwandsubstanz und repulsiert den Alveoleninhalt.
Fig. 290.
Schema, Druck und Zugverteilung innerhalb eines Zellasters darstellend
. In den Quadranten
III
u.
IV
sind spätere Zustände der Asterbildung dargestellt als in den Quadranten
I
u.
II
.
S
= Sphäre; zwischen
A
und
R
die Radialwaben der Strahlen;
E
= Dottereinlagerungen, für die dasselbe gilt wie für die Enchylemavakuolen. Im Quadranten
IV
ist für einen beliebigen Punkt
P
des interradialen Gebietes die Druckverteilung eingetragen. Nach R
HUMBLER
.
Fig. 291.
Fig. 292.
Fig. 291. Magnetische Kraftlinienspindel zwischen zwei ungleichnamigen (N. und S.) Polen. Photographie nach RHUMBLER.
Fig. 292. Lebendes Seeigelei (Toxopneustes variegatus) während der ersten Furchungsteilung 47 Minuten nach der Befruchtung. Nach E. B. WILSON.
Es läßt sich leicht einsehen, daß unter solchen einander entgegengesetzten Kräften zunächst die Zickzackanordnung der Schaumwände, die ruhenden gewöhnlichen Schäumen eigentümlich ist, in eine geradlinige, auf die Zentrosomen zentrierte übergehen muß, auch läßt sich begreifen, daß nicht alle Waben, die in gleicher Entfernung von den Zentrosomen liegen, die geschilderten Vorgänge in gleichem Grade zeigen. Die stärkste Verdichtung, die stärkste Attraktion und infolge hiervon die ausgiebigste Repulsion von Enchylema werden die direkt den Sphären anliegenden Waben (Fig. 290 A) erfahren, und von ihnen aus wird sich ein Maximum der Leistung auf diejenigen von den Sphären weiter abliegenden Waben fortpflanzen, die mit ihnen radiär in einer Flucht liegen und die wir, da sie sich strahlenförmig um die Sphären gruppieren, als Radialwaben (Fig. 290 A R) bezeichnen und in Gegensatz zu den zwischenliegenden Interradialwaben setzen wollen. Die Interradialwaben sind in Sachen „Wandattraktion und Enchylemarepulsion“ von vornherein den Radialwaben gegenüber im Nachteil, weil ihre der Sphäre zunächstliegende Wabe nicht direkt an die Sphäre, sondern nur an eine der Sphäre konzentrische Wand der A-Waben anstößt, die von Haus aus wegen weiterer Entfernung von der Sphäre weniger von ihr verdichtet und darum auch weniger attrahiert wird; die repulsierenden Kräfte werden sich demnach in der Weise dem Wabeninhalt gegenüber äußern, daß die diosmierbaren und die etwa vorhandenen filtrationsfähigen Substanzen nach Maßgabe des in den Wabenradien überwiegenden Attraktionsdruckes aus den Wabenradien heraus nach den interradialen Waben hin diosmieren. Da auf diese Weise die Radialwaben (A R) Enchylemainhalt an die Interradialwaben abgeben, so müssen sie sich durch den hierdurch bedingten Volumenverlust zu verkürzen streben, während die interradialen Waben in gleichem Maße sich durch die ihnen zugepreßten Substanzen auszudehnen suchen. Hieraus folgt, daß die Strahlen als in Longitudinalspannung befindlich angesehen werden müssen, während die interradialen Gebiete durch ihr Ausdehnungsstreben sich zwischen die Radien einpressen und die Radien mit senkrecht gegen sie gerichteten Komponenten auseinanderdrängen (vgl. Fig. 290 P im Quadranten IV). Diese Zug- und Druckverteilung im Strahlensystem stellt ein genaues Analogon zu derjenigen dar, wie man sie in magnetischen Kraftliniensystemen findet, die man in bekannter Weise durch Einwirkung von Magneten auf Eisenfeilicht bildlich sichtbar machen kann; auch hier sind die aus dem Eisenfeilicht gebildeten Strahlen als in Längsspannung bezw. Verkürzungsspannung anzusehen, während zwischen den Strahlen senkrecht gegen die Strahlen anpressende Kräfte (nämlich diejenigen einer gleichnamigen, also sich abstoßenden Induktion) vorhanden sind[703]; so erklärt sich in einfacher Weise die schon FOL[704] und vielen anderen aufgefallene Aehnlichkeit zwischen den Zellteilungsfiguren und den magnetischen Kraftlinienbildern (Fig. 291 u. 292), auf die schon von H. E. ZIEGLER[705] und besonders eingehend von GALLARDO[706] als vielleicht mechanisch-theoretisch verwertbar aufmerksam gemacht worden war; eine Aehnlichkeit, deren theoretische Auswertung um so verlockender erschien, als in neuerer Zeit noch REINCKE[707] zu zeigen vermochte, daß die mechanische Analogie zwischen Zellteilungs- und magnetischen Induktionsbildern auch für solche Magnete bezw. Sphären gilt, die mit ungleich großen Kräften arbeiten, und RALPH S. LILLIE überdies sogar gewisse Kernzustände der Zellteilung mit Hilfe von Magnetreihen zu kopieren vermochte[708].