Zweites Kapitel. Von der lebendigen Substanz. (continued 2)
Reading edition
Drei Hauptgruppen von chemischen Körpern und ihren Umsetzungsprodukten sind es vornehmlich, durch deren Vorhandensein sich die lebendige Substanz von der Substanz der leblosen Körper unterscheidet, das sind die Eiweißkörper, die Fette und die Kohlehydrate. Unter diesen drei Gruppen sind nur die Eiweißkörper und deren Derivate mit Sicherheit ganz allgemein in allen Zellen nachgewiesen worden, so daß man sie als die wesentlichen oder allgemeinen unter den organischen Bestandteilen der lebendigen Substanz den sämtlichen speziellen gegenüberstellen muß.
a) Die Eiweißkörper.
Die Eiweißkörper (Albuminosen, Proteine) spielen als diejenigen Körper, die für alles Leben, das augenblicklich die Erdoberfläche bevölkert, durchaus unentbehrlich sind, und die ihrer Masse nach den Hauptbestandteil aller organischen Verbindungen der Zelle ausmachen, die wichtigste Rolle in der Zusammensetzung der lebendigen Substanz. Sie bestehen ausnahmslos aus den Elementen Kohlenstoff, Wasserstoff, Schwefel, Stickstoff und Sauerstoff, unter denen der Stickstoff dasjenige Element ist, das die Eiweißkörper den anderen beiden Hauptgruppen der organischen Körper, den Kohlehydraten und Fetten gegenüber besonders charakterisiert, so daß man sie auch als die stickstoffhaltigen den stickstofffreien Körpern gegenübergestellt hat. Ihr Molekül ist zwar trotz der gewaltigen Fortschritte der Eiweißchemie seiner Atomverkettung nach noch nicht bis in alle Einzelheiten hinein bekannt, aber wir wissen aus einer Reihe von Analysen, bei denen das Molekül in eine große Menge selbst noch sehr kompliziert zusammengesetzter Moleküle gespalten wird, daß es eine ungeheuer komplizierte Konstitution haben muß und, obwohl es nur die fünf Elemente C, H, N, S und O enthält, doch eine Atomenzahl in sich birgt, die oft weit über tausend geht. PREYER[61] hat zuerst im Jahre 1866 eine Analyse des Hämoglobins ausgeführt, desjenigen Eiweißkörpers, der dem Blute und speziell den roten Blutkörperchen die charakteristische Farbe gibt und als Ueberträger des Sauerstoffs aus den Lungen durch das Blut zu den Zellen der Gewebe eine äußerst wichtige Rolle im Tierkörper spielt. PREYER fand die Zusammensetzung des Hämoglobinmoleküls:
C600H960N154Fe1S3O179
und obwohl diese Formel anfangs Befremden erregte, hat seitdem eine Reihe weiterer Analysen ganz ähnliche Resultate ergeben[62].
So läßt sich nach GRÜBLERs[63] Untersuchungen die Zusammensetzung des kristallisierten Eiweißes, das in Kürbissamen vorkommt, auf
C292H481N90O83S2
berechnen.
ZINOFFSKY[64] fand die Formel des Hämoglobins aus Pferdeblut sogar noch größer als PREYER, nämlich:
C712H1130N214O245Fe1S2
und Formeln von ähnlich hoher Konstitution sind auch für das Eiweiß, welches das Weiße des Hühnereies bildet, berechnet worden. Aus allen diesen Analysen ergibt sich, daß das Molekül der Eiweißkörper wegen der Menge der darin enthaltenen Atome außerordentlich groß sein muß[65].
Die physikalischen Eigenschaften der Eiweißkörper.
Die natürlich vorkommenden Eiweißkörper bilden in Wasser keine eigentlichen, sondern kolloidale Lösungen. Seitdem GRAHAM im Jahre 1861 zuerst kristalloide und kolloide Stoffe unterschieden hat, ist diese Unterscheidung wenigstens bezüglich des Löslichkeitsverhaltens der chemischen Stoffe immer schärfer charakterisiert worden. Während die kristalloiden Stoffe, wie z. B. fast alle Salze, in Wasser Lösungen bilden, indem sich ihre Moleküle gleichmäßig im Lösungsmittel isoliert voneinander verteilen, bleiben in den Lösungen kolloider Stoffe die Moleküle zu mehr oder weniger großen Komplexen miteinander verbunden, so daß sie als feine Partikel im Lösungsmittel suspendiert sind. Aus der kolloidalen Natur der Eiweißlösungen ergibt sich die wichtige Eigenschaft der Eiweißkörper wie andere kolloide Stoffe durch semipermeable Membranen nicht zu diffundieren. Bringt man in ein weites Glasrohr, dessen Oeffnung mit einer Membran, am besten von künstlichem Pergament, überzogen ist (Fig. 42), eine Lösung von Kochsalz oder einem anderen löslichen Salz in Wasser und hängt man das Glasrohr in ein Gefäß mit reinem Wasser, so findet man nach kurzer Zeit, daß die Salzlösung in dem inneren Glasrohr bedeutend an Konzentration abgenommen hat, während das Wasser im äußeren Gefäß jetzt einen ebenso großen Prozentgehalt an Salz besitzt wie die Lösung im inneren Glasrohr. Es ist also Salz aus dem Glasrohr durch die Membran in das äußere Wasser diffundiert, bis der Prozentgehalt an Salz in beiden Flüssigkeiten gleich war. Nimmt man aber statt des Salzes eine Lösung von Hühnereiweiß, die man erhält, wenn man das Weiße eines Hühnereies mit etwa 100 ccm Wasser tüchtig zusammenreibt und durchfiltriert, so kann man die Lösung im Dialysator, wie man diesen Apparat nennt, stunden- und tagelang stehen lassen, ohne daß eine Spur von Eiweiß aus dem inneren Rohr in das äußere Wasser diffundiert. Aus der kolloidalen Natur der Eiweißlösung erklärt sich diese Tatsache sehr einfach: die Eiweißmoleküle sind zu größeren Partikeln untereinander vereinigt, die zu groß sind, als daß sie durch die sehr feinen Poren der Membran hindurchgehen könnten, während den isolierten Molekülen der Salze kein Hindernis im Wege steht. Für die chemische Untersuchung der Eiweißkörper ist übrigens diese Eigenschaft von praktischer Bedeutung, denn man kann durch Dialyse die Eiweißkörper von allen Salzen, die etwa mit ihnen zusammen in Lösung sind, immer leicht trennen.
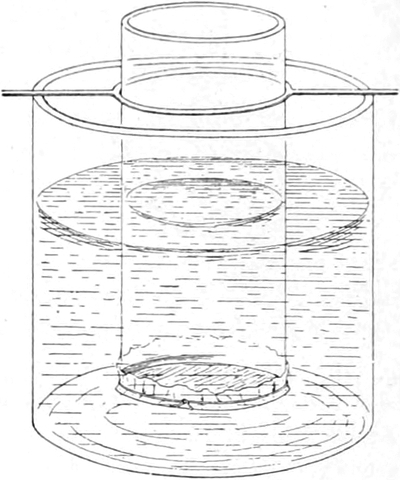
Fig. 42.
Dialysator
.
Schließlich darf nicht übersehen werden, daß die Eiweißmoleküle durch Einwirkung bestimmter Reagentien übergeführt werden können in Stoffe, welche durch Membranen diffundieren, ohne dabei die chemischen Eigenschaften der Eiweißkörper verloren zu haben. Diese Stoffe, in die z. B. die Eiweißkörper unter dem Einfluß der Verdauungssäfte des Magens und des Pankreas im Körper übergehen, werden als „Albumosen“ und „Peptone“ bezeichnet, und man weiß, daß sie durch Spaltung des ursprünglichen Eiweißmoleküls unter Wasseraufnahme entstehen, daß sie Hydrate der ursprünglichen Eiweißkörper vorstellen. Aus dieser Tatsache ergibt sich eine wichtige Schlußfolgerung. Da das Eiweißmolekül bei der Peptonisierung gespalten wird in Peptonmoleküle, die viel kleiner und daher diffusibel sind, die aber in chemischer Beziehung die Eigenschaften der Eiweißkörper haben, so folgt daraus, daß das ursprüngliche Eiweißmolekül kein einfaches Molekül ist, sondern ein polymeres Molekül, d. h. ein Molekül, das aus einer kettenartigen Verknüpfung vieler gleichartiger Moleküle besteht. Bei dem Uebergang in den Peptonzustand zerfällt das Eiweißmolekül unter Wasseraufnahme in die einzelnen gleichartigen Atomgruppen, die zwar noch sämtlich die chemischen Eigenschaften der Eiweißkörper haben, aber viel kleinere Moleküle vorstellen.
Hat die Unterscheidung GRAHAMs zwischen kristalloiden und kolloiden Stoffen bezüglich der Verschiedenheiten ihrer Löslichkeit gerade in neuerer Zeit zu sehr wichtigen Anschauungen und Erfahrungen geführt, so ist sie doch bezüglich der Verschiedenheiten im Kristallisationsvermögen nicht aufrecht zu erhalten gewesen. Die kristalloiden Stoffe sollten aus ihren Lösungen auskristallisieren können, die kolloiden Stoffe dagegen nicht. In Wirklichkeit kennen wir heute eine Menge Eiweißkörper, die echte Kristalle bilden können, wie die bereits genannten Eiweißkörper in den Kürbiskernen, die als Aleuronkörner in Pflanzensamen weit verbreitet vorkommen, und wie ferner das Hämoglobin der roten Blutkörperchen. Schüttelt man z. B. geschlagenes Meerschweinchenblut längere Zeit mit etwas Aether, wodurch das Hämoglobin aus der Substanz der roten Blutkörperchen ausgezogen und in die Blutflüssigkeit übergeführt wird, und läßt man einen Tropfen dieser Flüssigkeit auf einer Glasplatte langsam verdunsten, oder noch besser, vermischt man etwas Meerschweinchenblut mit Kanadabalsam, der in Aether gelöst ist, auf einem Objektträger und bedeckt das Ganze sogleich mit einem Deckgläschen, so scheiden sich allmählich sehr zierliche tetraederförmige Kristalle aus (Fig. 43 II), die reines Hämoglobin vorstellen. Ebenso ist es in neuerer Zeit gelungen, auch eine ganze Reihe anderer Eiweißkörper zur Kristallisation zu bringen.
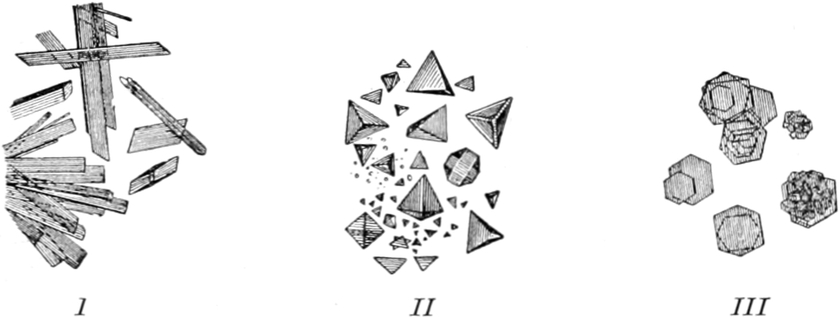
Fig. 43.
Hämoglobinkristalle
.
I
vom Menschen,
II
vom Meerschweinchen,
III
vom Eichhörnchen. Nach K
IRKES
.
Wenig aufgeklärt ist bisher eine weitere physikalische Eigentümlichkeit, die fast allen Eiweißkörpern mit Ausnahme weniger Stoffe dieser Gruppe, wie z. B. der Peptone, zukommt, das ist die Fähigkeit, zu gerinnen, zu koagulieren. Die Gerinnung besteht in einem Uebergang aus dem gelösten in einen festeren Zustand innerhalb des Lösungsmittels. Ein Mittel, das fast alle Eiweißkörper zur Gerinnung bringt, ist das Kochen. In einem frischen Hühnerei ist das Eiweiß in einer dicken, klaren, fadenziehenden Lösung vorhanden. Im gekochten Hühnerei dagegen ist es zu einer festen, weißen, undurchsichtigen Masse geworden, es ist koaguliert. Aus dünnen Lösungen kann sich das Eiweiß beim Kochen in Gestalt von feinen geronnenen Flocken ausscheiden. Indessen auch andere Mittel bringen das Eiweiß in seinen Lösungen zur Gerinnung und fällen es unter Trübung der Flüssigkeit durch Koagulation aus, wie z. B. gewisse organische Säuren und Alkohol. Daß die Koagulationsfähigkeit mit den kolloidalen Eigenschaften des Eiweiß in irgendeinem Zusammenhang steht, dafür scheint die Tatsache zu sprechen, daß auch anorganische Stoffe, wie Kieselsäure, in kolloidaler Lösung zu einer Gallerte gerinnen können. Stellt man z. B. Kieselsäure dar, indem man zu einer Lösung von kieselsaurem Natron Salzsäure hinzusetzt, wobei neben Kochsalz freie Kieselsäure entsteht, so kann man durch Dialyse die Kieselsäure von dem Kochsalz trennen, da sie als kolloider Körper im Gegensatz zu der Kochsalzlösung nicht durch Membranen diffundiert. Diese Kieselsäurelösung kann man aber durch Zuleiten einiger Kohlensäureblasen sofort in eine geronnene gallertähnliche Masse verwandeln.
Die chemische Zusammensetzung der Eiweißkörper.
Bis vor wenigen Jahren war unsere Kenntnis von der chemischen Zusammensetzung der Eiweißkörper noch eine sehr lückenhafte, und so fehlten uns auch noch die Anhaltspunkte, um bestimmte chemische Reaktionen mit ihnen zu machen. Trotzdem hatte man schon rein empirisch eine Reihe von Eiweißreaktionen ermittelt, die für die Eiweißkörper charakteristisch sind und die in Zweifelsfällen die Anwesenheit von Eiweiß ermitteln lassen. Diese üblichen Eiweißreaktionen, von denen allerdings eine allein nicht immer ausreichen würde, um mit vollkommener Sicherheit die Eiweißdiagnose zu gestatten, sind folgende:
Die Xanthoproteinprobe, die darin besteht, daß eine Eiweißlösung durch Kochen mit Salpetersäure gelb gefärbt wird, eine Farbe, die bei Zusatz von Ammoniak in Orange übergeht.
Die Biuretprobe: Macht man eine Eiweißlösung mit Kali- oder Natronlauge alkalisch, so nimmt sie im Kalten bei Zusatz eines Tropfens Kupfersulfatlösung eine klare, violette Farbe an.
Die MILLONsche Probe: Mit einer Lösung von Quecksilbernitrat und etwas salpetriger Säure längere Zeit gekocht, wird das Eiweiß rosenrot gefärbt.
Die ADAMKIEWICZsche Probe: Eine starke Eiweißlösung mit Eisessig versetzt, zeigt bei Zusatz von konzentrierter Schwefelsäure an der Grenzfläche beider Flüssigkeiten einen roten bis violetten Ring.
Die MOLISCHsche Probe: Eine Eiweißlösung mit einer alkoholischen Thymollösung versetzt, zeigt bei Zusatz von konzentrierter Schwefelsäure eine Rotfärbung.
Die Salzsäureprobe: Kochen mit konzentrierter Salzsäure löst die koagulierten Eiweißkörper unter Violettfärbung der klaren Flüssigkeit.
Die Ferrocyankaliumprobe: Eine Eiweißlösung, die mit Essigsäure versetzt ist, zeigt bei Zusatz von etwas Ferrocyankaliumlösung eine weiße Trübung.
Die Schwefelbleiprobe: Eine durch Kali- oder Natronlauge alkalisch gemachte Eiweißlösung liefert beim Kochen mit Bleiacetat einen schwarzen Niederschlag bezw. eine Braunfärbung von Schwefelblei.
Die Jodprobe: Als gutes mikroskopisches Erkennungsmittel der Eiweißkörper dient Zusatz von Jodtinktur oder einer Lösung von Jod in Jodkalium. Durch das Jod werden die Gerinnsel gelbbraun gefärbt.
Man hatte nun schon aus einigen dieser Proben gewisse Anhaltspunkte gewonnen für die Anwesenheit bestimmter Atomgruppen im Eiweißmolekül. So deutete z. B. die MILLONsche Probe darauf hin, daß ein aromatischer Atomkomplex im Eiweißmolekül enthalten ist, denn die MILLONsche Reaktion geben alle Benzolderivate, bei denen ein Wasserstoffatom durch eine Hydroxylgruppe vertreten ist. Ein tieferer Einblick in den Bau des Eiweißmoleküls wurde aber erst gewonnen durch die genauere Erforschung der Spaltungsprodukte des Eiweiß. Obwohl manche dieser Spaltungsprodukte bereits seit längerer Zeit bekannt sind, so haben doch erst die systematischen Untersuchungen von KOSSEL, besonders aber von EMIL FISCHER und seinen Schülern den gewaltigen Fortschritt in der Eiweißchemie hervorgerufen, den wir in den letzten Jahren erlebt haben. Ja, den Arbeiten von EMIL FISCHER verdanken wir auch bereits die ersten wichtigen Schritte in der künstlichen Synthese von Körpern der Eiweißgruppe.
Sowohl bei der Spaltung der Eiweißkörper mit Säuren oder Alkalien in der Siedehitze als auch bei der Spaltung, wie sie unter dem Einfluß der Verdauungsenzyme sich vollzieht, entstehen aus dem Eiweißmolekül eine ganze Anzahl von Aminosäuren, d. h. von Säuren der Fettsäurereihe, in denen ein Wasserstoffatom durch die Aminogruppe NH2 ersetzt ist. So erhält man z. B. als Produkte der Eiweißspaltung: Glykokoll oder Glyzin, d. i. Aminoessigsäure, Alanin, d. i. Aminopropionsäure, ferner Abkömmlinge des Alanins wie Serin, d. i. Aminooxypropionsäure und besonders aromatische Abkömmlinge des Alanins wie Phenylalanin, Tyrosin (Paraoxyphenylaminopropionsäure) und Tryptophan (Indolaminopropionsäure), sodann Asparaginsäure, d. i. Aminobernsteinsäure, Valin, d. i. Aminovaleriansäure, Leucin, d. i. Aminocapronsäure, und schließlich basische Stoffe wie Lysin, d. i. Diaminocapronsäure, Histidin, d. i. Imidazolalanin, Arginin, d. i. Guanidinaminovaleriansäure und viele andere, zum Teil noch nicht näher ermittelte Stoffe. Man muß daher das Eiweißmolekül auffassen als ein sehr komplexes Molekül, dessen hauptsächlichste Atomgruppen von verschiedenartigen Aminosäuren gebildet werden. Manche von diesen Aminosäuren enthalten zugleich aromatische Gruppen und in gewissen Eiweißkörpern finden sich auch Aminosäuren mit Kohlehydratgruppen vereinigt. Durch die Mannigfaltigkeit der Aminosäuren, durch die vielen Substitutionsmöglichkeiten, welche die Aminosäuren anderen Gruppen bieten und durch die große Zahl der in einem Eiweißmolekül enthaltenen Aminosäuren wird die ganze große Fülle der verschiedenartigen Eiweißkörper, welche die Organismenwelt zusammensetzen und wird auch zugleich die riesige Größe des Eiweißmoleküls verständlich. Hier ist durch Variation der Zahl, der Art und der Substitution von Aminosäuren im Molekül die Möglichkeit für eine ganz unabsehbare Mannigfaltigkeit von Stoffen der Eiweißgruppe gegeben und es wird noch lange dauern, bis wir auch nur die bekanntesten und verbreitetsten unter den Körpern der großen Eiweißgruppe bis in ihre sämtlichen spezifischen Konstituenten hinein analysiert haben werden. Das schließt nicht aus, daß EMIL FISCHER[66] schon jetzt mit großem Erfolg versucht hat, Stoffe, die den natürlich vorkommenden Eiweißkörpern ähnlich sind, synthetisch durch Aneinanderkoppelung von Aminosäuren aufzubauen. Auf diese Weise gelangte EMIL FISCHER zu einer Gruppe von Stoffen, die er als „Peptide“ bezeichnete.
Eine sehr häufige Verkoppelungsweise von zwei Molekülen in der organischen Chemie besteht darin, daß das eine Molekül eine OH-Gruppe, das andere ein H-Atom abspaltet, so daß die in jedem Molekül dadurch frei werdende Valenz sich gegenseitig absättigen kann, während als Nebenprodukt H2O entsteht. Auf diese Weise können z. B. zwei Glykokoll-Moleküle miteinander verkoppelt werden, so daß unter Wasseraustritt ein Körper entsteht, der als Glyzylglyzin bezeichnet worden ist:
H2N·CH2·COOH + H2N·CH2·COOH =
Glykokoll (Amidoessigsäure) Glykokoll (Amidoessigsäure)
H2N·CH2·CO-HN·CH2·COOH + H2O
Glyzylglyzin Wasser
In diesem Falle sind zwei Moleküle der einfachsten Aminosäure, der Aminoessigsäure, miteinander zu einem Molekül verkoppelt. Es ist ein „Dipeptid“ entstanden, das wir gewissermaßen als den ersten Schritt auf dem Wege zur Eiweißsynthese betrachten können. Indessen können nun auch verschiedenartige Aminosäuren nach demselben Prinzip zu Dipeptiden vereinigt werden, z. B. Glykokoll (Aminoessigsäure) mit Alanin (Aminopropionsäure) zu Glyzylalanin:
H2N·CH2·COOH + H2N·CH·CH3·COOH =
Glykokoll Alanin
H2N·CH2·CO-HN·CH·CH3·COOH + H2O
Glyzylalanin Wasser
Aber noch mehr. Es ist EMIL FISCHER nicht bloß gelungen, zwei, sondern eine ganze Anzahl, neuerdings bis zu 14 Aminosäure-Moleküle miteinander zu verkoppeln und so synthetisch verschiedenartige „Polypeptide“ aufzubauen, von denen einzelne bereits eine erstaunliche Aehnlichkeit mit Eiweißkörpern besitzen und eine Reihe der charakteristischen Eiweißreaktionen liefern, wenn sie auch in ihrer Gliederzahl und Zusammensetzung noch nicht den natürlich vorkommenden Eiweißkörpern gleichen. Es ist aber nicht unwahrscheinlich, daß die letzten Spaltungsprodukte der Eiweißkörper, die noch Eiweißnatur haben, also die bei der Eiweißverdauung entstehenden Peptone, chemisch solche einfacheren Polypeptide sind. Wie dem aber auch sei, nachdem EMIL FISCHER einmal den Weg gezeigt hat, auf dem wir in die Erkenntnis der Eiweißgruppe gelangen können, ist die Aufklärung dieser wichtigsten Gruppe von Bausteinen der lebendigen Substanz nur eine Frage der Zeit.
Eine natürliche Einteilung der Eiweißkörper würde als Einteilungsprinzip die Art der Atomgruppen (Aminosäuren, Benzolringe, Kohlehydratgruppen etc.) benutzen, die in den verschiedenen Eiweißkörpern enthalten sind. Eine solche Einteilungsweise wäre die allein wünschenswerte, aber wir sind augenblicklich noch nicht in der Lage, sie durchzuführen, weil von den meisten Eiweißkörpern die Zusammensetzung aus diesen oder jenen Gruppen noch nicht bekannt ist. Infolgedessen müssen wir uns vorläufig noch mit äußerlichen Einteilungsprinzipien begnügen und jede Einteilung der Eiweißkörper bleibt daher bis zu einem gewissen Grade willkürlich. Die verschiedenen Autoren haben deshalb auch im einzelnen sehr voneinander abweichende Einteilungen gegeben. Augenblicklich ist die Verwirrung besonders groß geworden, weil einerseits heute schon das natürliche Einteilungsprinzip sich zu entwickeln beginnt und andererseits doch noch die alten äußerlichen Einteilungsprinzipien unentbehrlich sind, so daß viele Stoffe, die früher auf Grund äußerlicher Eigenschaften wie der Fällbarkeit, Aussalzbarkeit, Diffusionsfähigkeit, Koagulierbarkeit etc. in eine gemeinsame Gruppe gebracht worden waren und einen gemeinsamen Namen erhalten hatten, jetzt weit voneinander getrennt werden müssen, weil sie eine total verschiedene Zusammensetzung erkennen lassen.
Als die einfachste Gruppe der Eiweißkörper können gewissermaßen die von EMIL FISCHER künstlich durch Aneinanderfügen von Aminosäuren hergestellten Peptide angesehen werden. Unter den Polypeptiden befinden sich manche, die bereits die Biuretreaktion geben und andere Eigenschaften mit den eigentlichen Eiweißkörpern gemeinschaftlich haben.
An die Polypeptide schließen sich die hydrolytischen Spaltungsprodukte der natürlich vorkommenden Eiweißkörper, die Albumosen und Peptone an, die sich einerseits durch Diffusibilität, schwere Fällbarkeit etc. von den nativen Eiweißkörpern unterscheiden, die sich aber andererseits durch eine Reihe von typischen Eiweißreaktionen, wie Biuretprobe, MILLONsche Reaktion etc. doch als echte Eiweißkörper zu erkennen geben.
Die nativen Eiweißkörper, d. h. die natürlich vorkommenden einfachen Körper der Eiweißgruppe werden sich in nächster Zeit bald auf Grund ihrer Spaltungsprodukte in ein natürliches System einordnen lassen. Bisher pflegte man zwei große Gruppen voneinander zu unterscheiden nach dem Verhalten ihrer Löslichkeit in Wasser, die Albumine und Globuline. Die Albumine sind in reinem Wasser ohne weiteres löslich. Zu ihnen gehört z. B. das Laktalbumin, das in geringer Menge in der Milch vorkommt, ferner das Serumalbumin, ein Albuminkörper, der in der Blutflüssigkeit enthalten ist, das Muskelalbumin, der in Wasser lösliche Eiweißkörper der Muskelzellen, das Pflanzenalbumin, das im Zellsaft der Pflanzenzellen gelöst ist, und manche andere. Das Eiereiweiß, das früher auch zu den nativen Eiweißkörpern gerechnet wurde, ist eine kompliziertere Eiweißverbindung. Die Globuline sind nur in Wasser löslich, wenn dasselbe neutrale Salze, aber nicht bis zur Sättigung, enthält. Sättigt man dagegen eine Globulinlösung mit Salzen, so fällt das Globulin in Flocken aus, eine Behandlungsweise, die als „Aussalzen“ bezeichnet wird, und ebenso fällt das Globulin aus, wenn man die Lösung durch Diffusion im Dialysator von den Salzen ganz befreit. Zu den Globulinen gehört z. B. das Serumglobulin, das ebenfalls in der Blutflüssigkeit gelöst ist, ferner das Fibrinogen, der dritte Eiweißkörper des Blutes, der beim Stehenlassen des Blutes außerhalb der Blutgefäße schon von selbst zu Fibrinflocken und -fasern gerinnt, dann das Myosin, der Globulinkörper der Muskeln, der ebenso beim Stehenbleiben von selbst koaguliert, ein Vorgang, der z. B. im absterbenden Muskel bei der Totenstarre eintritt, und schließlich das Pflanzenglobulin, das dem Inhalt der Getreidekörner seine klebrige Beschaffenheit verleiht und daher auch als „Kleber“ bezeichnet worden ist.
Neben den einfachen Eiweißkörpern kennen wir aber auch Eiweißverbindungen. Bei diesen Verbindungen der Eiweißkörper, die man auch als „Proteide“ den einfachen Eiweißkörpern oder Proteinen gegenübergestellt hat, verhält sich das Eiweißmolekül chemisch im allgemeinen wie eine schwache Säure, und man kann es durch Zusatz stärkerer Säuren vielfach aus seinen Verbindungen verdrängen, wobei die stärkere Säure an seine Stelle tritt. Dann wird das Eiweiß frei. Eine Gruppe der Eiweißverbindungen lernten wir bereits kennen, die Hämoglobine, die im Blut eine so hervorragende Rolle spielen und durch ihren Eisengehalt charakterisiert sind. Die verbreitetsten Verbindungen aber, in denen die Eiweißkörper ausnahmslos in jeder Zelle auftreten, sind die Nukleoproteide. Die Nukleoproteide stellen, wie ALTMANN[67] gezeigt hat, Verbindungen von Eiweiß mit Nukleinsäure vor, einer Säure, die selbst eine Verbindung ist von Phosphorsäure mit eigentümlichen basischen Körpern, den sogenannten Nukleinbasen: Guanin, Adenin, Xanthin und Hypoxanthin. Die Nukleoproteide sind in jeder Zelle in Form von Nukleinen in großer Menge im Zellkern enthalten. Den Nukleoproteiden durch ihren Phosphorgehalt ähnlich ist die Gruppe der Pseudonukleine (Paranukleine) und Pseudonukleoproteide (Paranukleoproteide), die aber scharf von den echten Nukleoproteiden unterschieden ist dadurch, daß sie keine Nukleinsäuren enthält. Ein solches an Kalk gebundenes Pseudonukleoproteid ist das Kasein, ein Körper, der den physiologischen Chemikern lange Zeit Schwierigkeiten gemacht hat. Das Kasein ist das an Kalk gebundene Pseudonukleoproteid der Milch, das zum Käse verarbeitet wird und die Eigentümlichkeit hat, beim Kochen der Milch nicht zu gerinnen, während es, wenn man es etwa durch Essigsäure von dem Kalk trennt, sofort ausfällt. Auch die im Eidotter enthaltenen Vitelline gehören, wie es scheint, zu den Pseudonukleoproteiden. Eine vierte Gruppe von Eiweißverbindungen sind die Glykoproteide, in denen das Eiweiß mit einem Kohlehydrat verbunden ist und unter denen vor allem das in den Zellen der Schleimdrüsen enthaltene Mucin, der Schleim, ferner die Amyloidsubstanz der Gefäßwände und der früher als „Eieralbumin“ bezeichnete Bestandteil des Eiereiweißes eine wichtige Rolle spielt.
Von besonderem Interesse erscheint es, daß in der lebendigen Substanz der Zelle die Eiweißverbindungen bei weitem die Hauptmasse bilden. Während man früher und vielfach noch heute die Vorstellung hatte, daß die Hauptmasse des Protoplasmas aus nativem Eiweiß besteht, haben schon REINKE und KRÄTZSCHMAR[68] gezeigt, daß es, wie sie sich ausdrücken, „lebenstätiges Protoplasma gibt, in dem sich keine Spur von Eiweißstoffen nachweisen läßt“. So besitzt der Zellkörper der Alge Vaucheria „ein durchaus eiweißloses Protoplasma“. Spätere Untersuchungen von HAMMARSTEN[69] und LILIENFELD[70] haben das für verschiedene andere Gewebe bestätigt, und SOSNOWSKI[71] hat das gleiche bei einzelligen Organismen gefunden. Die Hauptmasse des Protoplasmas besteht nicht aus reinen Eiweißkörpern, sondern aus komplizierten Eiweißverbindungen, die zum Teil ganz andere Eigenschaften haben wie die ersteren. Wir müssen endlich den althergebrachten Gedanken fallen lassen, daß das Protoplasma der Zelle einen einfachen Eiweißklumpen vorstelle. Die Eiweißverbindungen spielen im Protoplasma der meisten Zellen die Hauptrolle. Dabei ist aber immer zu berücksichtigen, daß wir es bei der chemischen Untersuchung mit abgetötetem Protoplasma zu tun haben.
Neben den echten Eiweißkörpern und ihren Verbindungen, die wir soeben charakterisiert haben, existiert schließlich eine Anzahl von Körpern, die sich in mancher Beziehung ähnlich verhalten wie die Eiweißkörper und deshalb als Albuminoide bezeichnet worden sind. Die Gruppe der Albuminoide ist eine wahre Rumpelkammer in der physiologischen Chemie. Sie enthält die verschiedenartigsten Körper, die teilweise wohl einfache Eiweißkörper, teilweise Verbindungen von Eiweißkörpern sind, die aber in ihrem chemischen Verhalten viel weniger Gleichartigkeit zeigen und noch viel weniger bekannt sind als die bisher genannten Stoffe der Eiweißgruppe. Vor allem rechnet man zu den Albuminoiden einen großen Teil derjenigen Stoffe, die von der Zelle als Skelettsubstanzen zur Stütze weicherer Teile des Organismus produziert werden. Ein näheres Eingehen auf die bisher bekannten Reaktionen, welche die einzelnen der zahlreichen Albuminoidkörper liefern, würde zu weit führen und für unseren Zweck überflüssig sein[72]. Es genügt, einige der wichtigsten Körper, die sämtlich in festem, ungelöstem Zustande auftreten, hier anzuführen. Solche zu den Albuminoiden gezählte Körper sind das Keratin, das in den meisten, von den Epidermiszellen der Haut produzierten Horngebilden (Hörnern, Hufen, Haaren, Federn, Nägeln etc.) enthalten ist, das Elastin, das die elastischen Fasern der Zellen des Bindegewebes und das mächtige gelbe Nackenband zusammensetzt, das Kollagen, das die organische Grundsubstanz der Knochen und Knorpel ausmacht und unter Wasseraufnahme beim Kochen in Leim übergeht, das Spongin, die Skelettsubstanz der Badeschwämme, das Konchiolin, die organische Substanz der Muschel- und Schneckenschalen, das Kornein, die der Korallen, und viele andere Substanzen, die besonders bei wirbellosen Tieren skelettbildend auftreten.
Schließlich wird zu den Albuminoiden vielfach auch eine Reihe von Körpern gerechnet, die ihrer Zusammensetzung nach noch gar nicht bekannt sind, die aber jedenfalls Derivate der Eiweißkörper vorstellen und im Leben des Organismus, vor allem für die Verdauung, die größte Bedeutung besitzen. Das sind die gelösten Fermente oder Enzyme, wie z. B. das Pepsin, das die Drüsenzellen des Magens, das Ptyalin, das die Zellen des Pankreas und der Speicheldrüsen, das Trypsin, das ebenfalls die Pankreaszellen produzieren, und zahllose andere. Auf die Eigentümlichkeiten dieser Körper und ihre Rolle im Leben des Organismus werden wir an einer anderen Stelle näher einzugehen haben.
Die hier gegebene Charakterisierung der Eiweißkörper und ihrer Verbindungen würde also etwa zu folgender Klassifikation derselben führen, die natürlich, wie nochmals betont sei, nur ein ganz provisorisches Schema zum Ausdruck bringen kann.
Eiweißkörper.
Synthetisch hergestellte Peptide. Dipeptide. Polypeptide.
Hydrolytisch gespaltene Eiweißkörper. Albumosen. Peptone.
Native Eiweißkörper. Albumine. Globuline.
Eiweißverbindungen oder Proteide. Hämoglobine. Nukleoproteide. Pseudonukleoproteide. Glykoproteide.
Albuminoide. Skeletine. Enzyme?
** *
Als ständige Begleiter der Eiweißkörper im Organismus treten gewisse Abkömmlinge des Eiweißes auf, die wir in zwei Gruppen, nämlich in stickstoffhaltige und stickstofffreie Spaltungsprodukte, trennen und an dieser Stelle verzeichnen können. Werfen wir zuerst einen Blick auf die stickstoffhaltigen Spaltungsprodukte, so treten wir mit ihnen bereits in die Reihe derjenigen Stoffe ein, deren chemische Konstitution schon seit längerer Zeit genau bekannt ist. Es sind das die sogenannten „Stoffe der regressiven Eiweißmetamorphose“. Dahin gehören z. B. die bei der Eiweißverdauung unter dem Einfluß des Pankreastrypsins auftretenden Spaltungsprodukte, unter denen die Aminosäuren, deren wichtigste oben genannt wurden, die Hauptrolle spielen. Dahin gehören aber vor allem auch die bei höheren Tieren durch den Harn in größerer Menge ausgeschiedenen Stoffe. Unter diesen steht in erster Reihe der Harnstoff (NH2)2CO, der von allen stickstoffhaltigen Endprodukten der Eiweißzersetzung das stickstoffreichste ist, und dessen künstliche Synthese bereits WÖHLER im Jahre 1828 gelang. Nächst dem Harnstoff ist der wichtigste Stoff die Harnsäure C5H4N4O3; ihr reiht sich die Hippursäure an und das aus der Eiweißzersetzung in den Muskeln stammende Kreatin und Kreatinin. Ferner sind die bereits erwähnten Nukleinbasen, wie Xanthin, Hypoxanthin oder Sarkin, Adenin und Guanin, als Endprodukte der Zersetzung von Nukleinen im lebendigen Organismus angetroffen worden, von denen namentlich das letztere, an Kalk gebunden, sehr häufig in den Hautzellen von Amphibien und Fischen vorkommt, in denen seine Kristalle den bekannten Silberglanz erzeugen. Schließlich ist noch eine Gruppe stickstoffhaltiger Körper, die Lecithine, die den Fetten nahe stehen, aber phosphorsäurehaltig sind und nach HOPPE-SEYLER wahrscheinlich in keiner lebendigen Zelle fehlen, als Spaltungsprodukte der Eiweißkörper und speziell wohl der phosphorhaltigen Proteide zu betrachten, mit denen sie zusammen vorkommen.
Unter den stickstofffreien Endprodukten der Eiweißzersetzung steht allen voran die von jeder Zelle produzierte Kohlensäure. Ferner sind wichtig die Milchsäure, die Oxalsäure und die Schwefelsäure. Auch haben wir jedenfalls als Derivate von Eiweißverbindungen die Cholestearine anzusehen, die in aller lebendigen Substanz vorzukommen scheinen, aber nur unter bestimmten Verhältnissen in Form von perlmutterglänzenden Schüppchen zu größerer Anhäufung gelangen, wie z. B. an der Oberfläche der Haut und am Schnabel der Vögel, sowie in pathologischen Zuständen als Gallensteine in der Galle. Ihrer chemischen Natur nach sind die Cholestearine einwertige Alkohole, die mit Fettsäuren fettähnliche Verbindungen eingehen können.
b) Die Kohlehydrate.
Im Gegensatz zu den Eiweißkörpern sind die Kohlehydrate stickstofffrei. Ihr Molekül enthält nur die drei Elemente: Kohlenstoff, Wasserstoff und Sauerstoff, und zwar bei den natürlichen Kohlehydraten immer in der typischen Weise, daß die Anzahl der Kohlenstoffatome entweder fünf oder sechs oder ein Mehrfaches davon beträgt, weswegen diese Gruppen den Namen „Pentosen“ und „Hexosen“ erhalten haben, während die Anzahl der Wasserstoffatome stets das Doppelte von der Anzahl der Sauerstoffatome gibt, so daß also Wasserstoff und Sauerstoff in demselben gegenseitigen Verhältnis wie im Wasser vorhanden sind, ein Umstand, der eben zu der Bezeichnung „Kohlehydrate“ geführt hat. Die Kohlehydrate sind zwar ebenfalls weit verbreitet und besitzen namentlich für den Aufbau der lebendigen Substanz in den Pflanzenzellen eine sehr große Bedeutung, aber es gibt doch Formen der lebendigen Substanz, in denen freie Kohlehydrate nicht nachgewiesen werden konnten; sie sind also nicht allgemeine Bestandteile der lebendigen Substanz. Die Gruppe der Kohlehydrate bietet ferner chemisch bei weitem einfachere Verhältnisse als die der Eiweißkörper, und ist ebenfalls durch die klassischen Arbeiten von EMIL FISCHER[73] schon vor längerer Zeit mehr und mehr aufgeklärt worden. In einem kurzen Ueberblick mögen die wesentlichsten Momente hier zusammengefaßt werden.
Von den beiden Gruppen der natürlich vorkommenden Kohlehydrate haben die Pentosen bisher noch kein besonderes physiologisches Interesse gewonnen. Dagegen spielen eine ungemein wichtige Rolle in der ganzen organischen Welt die Hexosen. Wie alle Kohlehydrate haben die Hexosen entweder Aldehyd- oder Keton-Natur, d. h. sie besitzen in ihrer Kohlenstoffkette entweder die endständige Aldehydgruppe oder die zwischen zwei Kohlenstoffatome der Kette eingefügte Ketongruppe
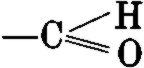

Man spricht daher von Aldohexosen und von Ketohexosen. Als Beispiele mögen dienen:
Aldohexosen: Ketohexose:

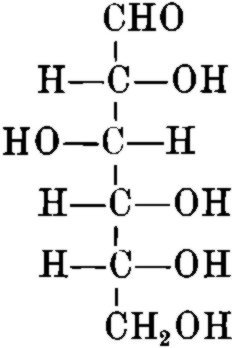
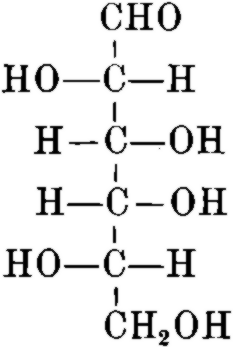
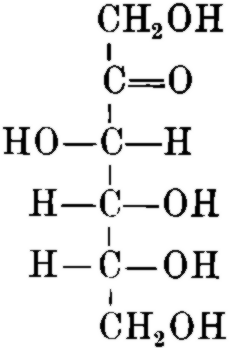
d-Glukose l-Galaktose d-Fruktose
Man pflegt die Hexosen einzuteilen in Monosaccharide, Disaccharide und Polysaccharide, von denen die beiden letzten Gruppen polymere Anhydridformen der ersten Gruppe sind.
Die Monosaccharide haben sämtlich die Formel C6H12O6. Zu den Monosacchariden gehören hauptsächlich der Traubenzucker (Dextrose oder Glukose) und der Fruchtzucker (Lävulose oder Fruktose), beide in Pflanzensäften, ersterer auch im tierischen Organismus weit verbreitet, sowie ferner ein aus dem Milchzucker (Laktose) gewonnenes Monosaccharid, die Galaktose. Eine der bemerkenswertesten Eigenschaften der Monosaccharide besteht darin, daß sie leicht Sauerstoff aus ihrer Umgebung aufnehmen und infolgedessen sauerstoffreiche Körper reduzieren, eine Eigentümlichkeit, auf der die wichtigsten Proben zu ihrer Erkennung beruhen, wie die TROMMERsche Probe (Reduktion von Kupferoxyd zu Kupferoxydul), die BÖTTGERsche oder NYLANDERsche Probe (Reduktion von Wismutoxyd zu metallischem Wismut), und die Silberprobe (Reduktion von Silberoxyd zu metallischem Silber)[74].
Eine sehr charakteristische Eigentümlichkeit des Traubenzuckers ist seine Gärungsfähigkeit. Er wird nämlich durch Hefezellen[75] (Saccharomyces) gespalten in Alkohol und Kohlensäure:
C6H12O6 = 2 C2H5OH + 2 CO2.
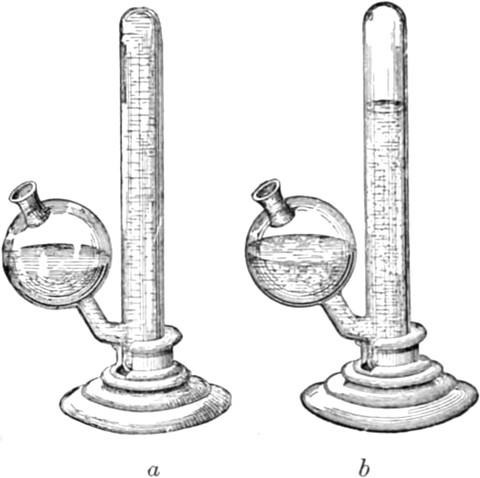
Man stellt solchen Gärungsversuch am besten in einem Gärungsröhrchen (Fig. 44) an, indem man dasselbe mit einer Traubenzuckerlösung füllt, die mit frischer Bierhefe gemischt ist, so daß die Flüssigkeit den langen, oben blind geschlossenen Schenkel des Röhrchens vollständig ausfüllt. Bei einer Temperatur von ca. 30–40° C tritt alsdann eine ziemlich energische Spaltung des Traubenzuckers ein, so daß fortwährend wie in einem Glase Sekt kleine Kohlensäurebläschen aufsteigen und sich an dem oberen Ende ansammeln. Je mehr Kohlensäure sich oben ansammelt, um so mehr wird die Flüssigkeit aus dem langen Schenkel heraus in den kugligen Teil des Röhrchens gedrängt. Am Geruch der Flüssigkeit erkennt man ohne weiteres die Anwesenheit von Alkohol. Schließlich sei noch eine Eigenschaft der Monosaccharide, die sie mit allen löslichen Kohlehydraten teilen, erwähnt, das ist ihre Fähigkeit, die Polarisationsebene zu drehen, und zwar, wie ihr Name bereits sagt, die Dextrose nach rechts, die Lävulose nach links.
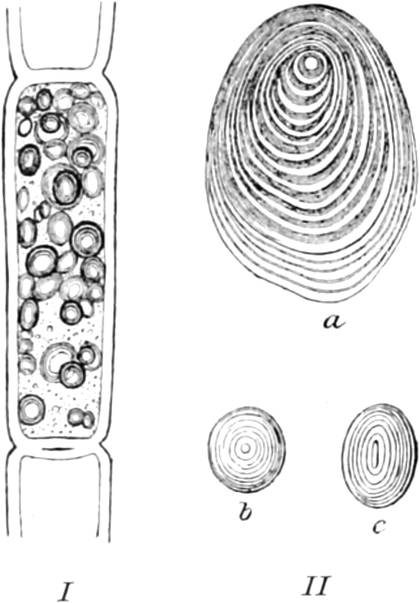
Fig. 44. Gärungsröhrchen; a frisch gefüllt, b mit Kohlensäureentwicklung. In dem geraden Schenkel hat sich bereits ein Quantum Kohlensäure oben angesammelt. Fig. 45. I Pflanzenzelle mit Stärkekörnern. II Stärkekörner isoliert. a von der Kartoffel, b vom Mais, c von der Erbse.
Die Disaccharide können wir uns aus den Monosacchariden entstanden denken, indem zwei Moleküle der letzteren zusammengetreten sind und zusammen ein Molekül Wasser verloren haben, so daß wir für sie die Formel gewinnen: C12H22O11. Unter den Disacchariden sind vor allem bemerkenswert der Rohrzucker (Saccharose), der im Zellsaft des Zuckerrohres in großen Mengen enthalten ist, der Malzzucker (Maltose) aus dem Malz, und der Milchzucker (Laktose), das Kohlehydrat der Milch. Durch gewisse Mittel, wie Kochen mit verdünnten anorganischen Säuren oder Einwirkung bestimmter Fermente kann man die Disaccharide unter Wasseraufnahme spalten, so daß sie wieder in die entsprechenden Monosaccharide übergehen, die in ihrem Molekül zusammengekoppelt sind. So wird die Saccharose durch die „Invertase“ gespalten in ein Traubenzucker- und ein Fruchtzuckermolekül, die Maltose durch die „Maltase“ in zwei Traubenzuckermoleküle und die Laktose durch die „Laktase“ in ein Galaktose- und ein Traubenzuckermolekül. Bei Berührung mit gewissen Gärungserregern werden die Disaccharide zwar nicht direkt zur Gärung veranlaßt, wohl aber zunächst durch die entsprechenden Fermente in Monosaccharide übergeführt, die nun ihrerseits der gärenden Wirkung dieser Organismen zugänglich sind. Dabei entsteht z. B. bei der Einwirkung von Bacterium lacticum auf Milchzucker schließlich Milchsäure:
C6H12O6 = 2 C3H6O3
ein Vorgang, der gegenüber der alkoholischen Gärung durch Hefepilze als Milchsäuregärung bezeichnet wird, und auf dem das Sauerwerden der offen an der Luft stehenden Milch beruht. Unter Einwirkung eines anderen Gärungserregers, des Bacillus butyricus, kann schließlich die Milchsäure noch weiter zerlegt werden, und zwar in Buttersäure, Kohlensäure und Wasserstoff:
2 C3H6O3 = C4H8O2 + 2 CO2 + 4 H
so daß sich also der Alkohol- und Milchsäuregärung noch eine Buttersäuregärung zugesellt.
Die Polysaccharide schließlich stellen noch weitergehende Anhydridstufen der Monosaccharide vor, indem sich mehrere Monosaccharidmoleküle unter Austritt je eines Moleküls Wasser vereinigen, so daß ihre Formel ein Mehrfaches von C6H10O5 vorstellt. Unter den Polysacchariden befindet sich eine Reihe von Körpern, von denen die einen im Leben der Pflanzenzelle, die anderen in vielen tierischen Zellen eine wichtige Rolle spielen und weit verbreitet sind. Das ist vor allem die Stärke, die in Form von konzentrisch geschichteten Körnchen (Fig. 45) in allen grünen Zellen der Pflanzen auftritt, ferner das Glykogen, das in der Gestalt von Schollen und Krümeln besonders in den Zellen der Leber und der Muskeln vorkommt, und schließlich die Zellulose, welche die Zellmembranen der Pflanzenzellen bildet. Diese Körper der Polysaccharidgruppe unterscheiden sich sämtlich voneinander in sehr charakteristischer Weise durch ihr Verhalten gegen Jodlösungen. Stärke wird nämlich durch Jod intensiv blau, Glykogen mahagonibraun und Zellulose gar nicht, sondern nur bei Anwesenheit von Jod und Schwefelsäure blau gefärbt.
** *
Neben den freien Kohlehydraten existieren schließlich Verbindungen von Kohlehydraten in der lebendigen Substanz, z. B. mit Eiweißkörpern, von denen wir als Beispiel das Mucin bereits oben kennen gelernt haben.
Ebenso haben wir schon die wesentlichsten Zersetzungsprodukte der Kohlehydrate berührt, die, wie Milchsäure, Buttersäure, Kohlensäure etc., auch sämtlich in der lebendigen Substanz angetroffen werden können.
c) Die Fette.
Auch die Fette gehören nicht zu den allgemeinen Bestandteilen der lebendigen Substanz, sind aber hauptsächlich in tierischen Zellen weit verbreitet. Ebenso wie die Kohlehydrate sind die Fette stickstofffrei und enthalten nur die Elemente Kohlenstoff, Wasserstoff und Sauerstoff. Aber sie unterscheiden sich ihrer chemischen Natur nach wesentlich von den Kohlehydraten. Sie stellen nämlich sogenannte Ester vor, d. h. Verbindungen, in denen sich eine Säure mit einem Alkohol unter Wasseraustritt vereinigt hat. Der Alkohol, der allen Fetten zugrunde liegt, ist das Glyzerin C3H5(OH)3, und die Säuren, die an das Glyzerin gebunden sind, gehören der Fettsäurereihe an, deren allgemeine Formel CnH2nO2 ist und die als Säuren charakterisiert sind durch den Besitz der Karboxylgruppe —COOH. Da das Glyzerin einen dreiwertigen Alkohol repräsentiert, so sind in den neutralen Fetten immer drei Moleküle der Fettsäuren mit einem Molekül Glyzerin zu Triglyzeriden verbunden. Die allgemeine Formel der Fette ist daher:
C3H5(OH)3 + 3 CnH2nO2 - 3 H2O.
Als Beispiele der Fettsäuren mögen hier angeführt sein die
Ameisensäure = H COOH
Essigsäure = C H3 COOH
Propionsäure = C2 H5 COOH
Buttersäure = C3 H7 COOH
Valeriansäure = C4 H9 COOH
Kapronsäure = C5 H11COOH
Palmitinsäure = C15H31COOH
Margarinsäure = C16H33COOH
Margarinsäure = C17H35COOH
Daneben kommt noch die nicht zur normalen Fettsäurereihe gehörende Oelsäure C17H33COOH an Glyzerin gebunden vor in den verschiedenen Oelen.
Entsprechend dieser Zusammensetzung lassen sich die neutralen Fette durch bestimmte Mittel unter Wasseraufnahme in ihre Bestandteile, d. h. in Glyzerin und freie Fettsäuren, zerlegen. Diese Spaltung erfolgt z. B. im Organismus unter dem Einfluß bestimmter Verdauungsenzyme, tritt aber ferner auch ein, wenn man neutrale Fette mit alkalischen Flüssigkeiten, etwa Kali- oder Natronlauge, kocht. Dabei verbinden sich die freiwerdenden Fettsäuren mit dem Alkali und bilden die sogenannten Seifen, die man als Kali-, Natron-, Kalkseifen etc. unterscheidet.
Die Fette sind sämtlich leichter als Wasser und lösen sich in Wasser nicht. Dagegen sind sie leicht löslich in Aether und Alkohol. Eine charakteristische Eigenschaft schließlich, die für die mikroskopische Erkennung von Fetttröpfchen in der Zelle Bedeutung hat, ist ihre Fähigkeit, Ueberosmiumsäure zu reduzieren zu metallischem Osmium, das sich als schwarzer Ueberzug auf den Fettkügelchen ablagert. Indessen ist diese Osmiumsäurereaktion für die Fettdiagnose allein nicht als sicheres Kriterium zu verwenden, denn es gibt zweifellos noch andere reduzierende Stoffe, die unter gewissen Umständen sich durch Osmium schwärzen können. Daher ist die Osmiumreaktion des Fettes immer nur im Verein mit den anderen Momenten, Löslichkeit in Aether und Alkohol, starkes Lichtbrechungsvermögen etc., für die Diagnose zu benutzen.
d) Die anorganischen Bestandteile der lebendigen Substanz.
Ebenso wie wir unter den organischen Verbindungen der Zelle die allgemeinen Bestandteile (Eiweißkörper) den speziellen (Kohlehydraten und Fetten) gegenüberstellen konnten, so können wir auch unter den anorganischen dieselbe Scheidung treffen.
Das vorwiegende Interesse haben davon begreiflicherweise wieder die allgemeinen anorganischen Bestandteile, unter denen wir das Wasser, die Salze und die Gase unterscheiden.
Das Wasser ist derjenige Bestandteil der lebendigen Substanz, der ihren flüssigen Zustand erzeugt und dadurch die leichte Verschiebbarkeit der Teilchen ermöglicht, die unbedingt notwendig ist für das Zustandekommen der Lebensvorgänge. Es ist teils chemisch gebunden als „Konstitutionswasser“, teils frei als Lösungsmittel der verschiedensten Stoffe in der Zelle enthalten. Dementsprechend ist das Wasser in reichlicher Menge vorhanden, so daß es an Gewicht durchschnittlich über 50 Proz. der lebendigen Substanz ausmacht. Untersucht man z. B. den gesamten Wassergehalt des menschlichen Körpers, der bei der großen Mannigfaltigkeit der verschiedensten Gewebeformen eine gute Durchschnittszahl liefert, so findet man, wie sich aus den eingehenden Untersuchungen BEZOLDs ergibt, etwa 59 Proz. Wasser. Die verschiedenen Gewebe verhalten sich dabei aber sehr verschieden. So enthalten die Knochen nur etwa 22 Proz., die Leber 69 Proz., die Muskeln 75 Proz. und die Nieren 82 Proz. Wasser. Hiernach kann es nicht auffallen, wenn der Wassergehalt der lebendigen Substanz zwischen verschiedenen Tierarten noch viel mehr schwankt, und wenn wir zwischen den geringen Spuren von Wasser, die ein eingetrocknetes, aber noch lebensfähiges Rädertierchen enthält, und dem mehr als 98 Proz. betragenden Wassergehalt gewisser, pelagisch lebender Rippenquallen alle Uebergänge im Prozentgehalt antreffen.
Im Wasser gelöst finden sich ferner viele Salze, die in keiner lebendigen Substanz fehlen. Ganz besonders wichtig scheinen zu sein die Chlorverbindungen, sowie die kohlensauren, schwefelsauren und phosphorsauren Salze der Alkalien und alkalischen Erden, also vor allem das Chlornatrium (Kochsalz), Chlorkalium, Chlorammonium, sowie kohlensaures, schwefelsaures und phosphorsaures Natrium, Kalium, Magnesium, Ammonium und Calcium.
Schließlich kommt von Gasen in aller lebendigen Substanz vor die Kohlensäure, und zwar, soweit sie nicht chemisch gebunden ist, fast stets in Wasser absorbiert, selten, wie z. B. bei manchen einzelligen Organismen, den Rhizopoden, in Form von Gasblasen.
Die speziellen anorganischen Bestandteile dieser oder jener Zellen bieten eine große Mannigfaltigkeit, indessen ist es für unsere Zwecke nicht notwendig, hier näher darauf einzugehen. Auffallend ist aber, daß in gewissen Zellen sogar freie Mineralsäuren auftreten, und zwar Salzsäure, die von bestimmten Zellen der Magendrüsen bei den Wirbeltieren produziert, und Schwefelsäure, die bei manchen Meeresschnecken von den Zellen der Speicheldrüsen ausgeschieden wird.
e) Verteilung der Stoffe auf Protoplasma und Kern.
So bedeutend die Fortschritte in der morphologischen Erkenntnis der Zelle in den letzten Jahrzehnten gewesen sind, und so eingehend uns die mikroskopische Forschung mit den feinsten Strukturverhältnissen der Zelle bekannt gemacht hat, so gering sind auf der anderen Seite unsere Kenntnisse von der chemischen Natur der einzelnen morphologischen Bestandteile. Hier ist der Punkt, an dem die physiologische Mikrochemie mit ihrer Arbeit einsetzen muß. Nur die Kombination von mikroskopischer Beobachtung und chemischer Reaktion ist im stande, die Brücke zu bauen zwischen dem, was wir einerseits morphologisch als Grundsubstanz und mannigfaltig geformte Bestandteile im Protoplasma und Kern kennen gelernt haben, und dem, was uns anderseits die grobe chemische Analyse als Bestandteile der lebendigen Substanz überhaupt gezeigt hat. Diese Brücke zwischen Morphologie und Chemie der Zelle zu schlagen, ist eine schwierige Aufgabe, da die Mehrzahl der Reaktionen, die man im Reagenzglas bequem und leicht anstellen kann, unter dem Mikroskop bei der Kleinheit der Objekte teils sehr undeutliche Resultate gibt, teils ganz im Stiche läßt. Es bedarf also vor allem erst der Ausbildung feiner und zuverlässiger mikrochemischer Methoden. Dennoch sind die ersten Schritte in dieser Richtung bereits getan, und wir haben schon hier und dort begonnen, einen Einblick in die Verteilung der chemisch charakterisierten Stoffe im Zellinhalt zu gewinnen.
Es hat sich gezeigt, daß das, was wir als morphologische Differenzierungen im Zellinhalt gefunden haben, sich auch chemisch different verhält. Vor allem haben die Untersuchungen von MIESCHER, SCHWARZ, ZACHARIAS, ALTMANN, KOSSEL, LÖWIT, MALFATTI und anderen ergeben, daß charakteristische chemische Unterschiede bestehen zwischen den Bestandteilen, welche die beiden wesentlichen Zellelemente, das Protoplasma und den Kern, zusammensetzen.
Die Eiweißkörper, die allein die allgemeinen chemischen Zellbestandteile vorstellen, finden sich zwar sowohl im Protoplasma als im Zellkern, indessen hat man einen sehr bemerkenswerten Unterschied zwischen ihnen gefunden. Es hat sich nämlich herausgestellt, daß sich im Kern ganz vorwiegend die phosphorsäurehaltigen Verbindungen der Eiweißkörper, und zwar speziell die echten Nukleine, finden[76], die im Protoplasma dagegen ganz zu fehlen scheinen, während das Protoplasma seinerseits zum größten Teile aufgebaut wird aus den kompliziertesten Eiweißverbindungen, vor allem den Pseudonukleoproteiden, den Glykoproteiden, den Vitellinen und verwandten Körpern. Um diese Tatsache zu erhärten, gibt es ein einfaches chemisches Mittel. Die Nukleine sind nämlich, wie MIESCHER[77] gezeigt hat, im Gegensatz zu anderen Eiweißkörpern und Eiweißverbindungen resistent gegen die Verdauung mit Magensaft. Bringt man daher Zellen der verschiedensten Art mit künstlichem Magensaft zur Verdauung, so werden alle anderen Eiweißkörper verdaut, und die Nukleine bleiben übrig. Dabei findet man denn, daß der ganze Protoplasmakörper verdaut wird, während die Zellkerne unter unbedeutender Volumenabnahme mit etwas zernagtem Kontur zurückbleiben, und prüft man nun die zurückgebliebene Substanz des Kerns mit den bekannten Kernfärbemitteln, so zeigt sich, daß das, was fehlt, der Kernsaft ist[78] und vielleicht auch die achromatische Substanz, denn die ganze übrig bleibende Masse speichert die Kernfärbemittel mehr oder weniger stark auf. Daraus geht also hervor, daß die chromatische Substanz und die Kernkörperchen aus echten Nukleinen bestehen, während das Protoplasma der Zelle aus anderen Stoffen der Eiweißgruppe zusammengesetzt ist. Mit einer mikrochemischen Reaktion haben LILIENFELD und MONTI[79] in KOSSELs Laboratorium den Nachweis zu führen gesucht, daß der Phosphor speziell im Zellkern lokalisiert ist. Setzt man zu einer phosphorsäurehaltigen Substanz molybdänsaures Ammon, so entsteht eine Verbindung, die Phosphormolybdänsäure, die durch Einwirkung von Pyrogallol eine dunkle braunschwarze Färbung annimmt. In der Tat konnten LILIENFELD und MONTI zeigen, daß sich mittels dieser Reaktion in den verschiedenartigsten Zellen die Kerne schwarz färben, während das Protoplasma ungefärbt bleibt. Allein es darf doch nicht unerwähnt bleiben, daß bald darauf von RACIBORSKI, GILSON und HEINE der Einwand gegen die Reaktion erhoben worden ist, es handle sich dabei nur um eine Aufspeicherung des molybdänsauren Ammons im Kern, die etwa der Aufspeicherung der Kernfarbstoffe im Zellkern analog sei. Demnach werden wir zunächst noch vorsichtig sein müssen in den Schlußfolgerungen, die sich aus dieser Reaktion ergeben.
Ueber die Lokalisation eisenhaltiger Proteide in der Zelle hat besonders MACALLUM[80] eine Reihe ausgezeichneter Untersuchungen gemacht, in denen er fand, daß eisenhaltige Eiweißverbindungen im Zellkern vorhanden sind, von hier aus aber sich, wie es scheint, auch im Protoplasma ausbreiten können. Daß endlich im Protoplasma die einfachen nativen Eiweißkörper meist gänzlich fehlen, wurde oben schon erörtert.
Die Kohlehydrate scheinen auf das Protoplasma beschränkt zu sein; wenigstens sind bisher keine Kohlehydrate im Kern gefunden worden. Im Protoplasma dagegen treten die Kohlehydrate nicht selten als geformte Bestandteile auf, so z. B. das Glykogen in Form von Schüppchen und Krümchen im Protoplasma der Leberzellen, die Stärkekörner allgemein im Protoplasma aller grünen Pflanzenzellen und die Zellulose als Protoplasmaprodukt an der Oberfläche der Pflanzenzelle.
Von den Fetten gilt dasselbe wie von den Kohlehydraten. Im Zellkern scheinen sie ausnahmslos zu fehlen. Dagegen finden sie sich im Protoplasma als Fett- und Oeltröpfchen weit verbreitet und sind immer an ihrem starken Lichtbrechungsvermögen oder in dubio an ihrer Schwärzung durch Ueberosmiumsäure und Löslichkeit in Aether und Alkohol zu erkennen.
Ueber die Verteilung der anorganischen Bestandteile der Zelle ist fast gar nichts bekannt. Nur von den Kaliverbindungen scheint es nach Untersuchungen von VAHLEN, als ob sie ausschließlich im Protoplasma, nicht im Zellkern, zu finden wären.
Das sind die wesentlichen bisher bekannt gewordenen Tatsachen. Die große Masse der als Granula bezeichneten Stoffe des Protoplasmas sowie die gelösten Körper des Zellinhalts sind bisher ihrer chemischen Zusammensetzung nach noch völlig unbekannt. Hier eröffnet sich der physiologisch-chemischen Forschung der Zukunft ein unabsehbares Gebiet.
D. Die physikalischen Eigenschaften der lebendigen Substanz.
1. Die Konsistenz der lebendigen Substanz.
Obwohl bereits die älteren Zellforscher, wie SCHLEIDEN, MOHL und andere, der direkten Beobachtung folgend, den Inhalt der Zelle als flüssig betrachteten, indem sie seine Konsistenz mit der des Schleims verglichen, machte sich später mehrfach eine Auffassung geltend, die merkwürdigerweise das Protoplasma als eine in ihrer Grundlage feste Substanz zu betrachten geneigt war. Diese Vorstellung entsprang zunächst aus rein theoretischen Ueberlegungen. BRÜCKE[81] besonders meinte, der Zellinhalt könne deshalb nicht eine flüssige Masse sein, weil die Lebensvorgänge unmöglich an ein flüssiges Substrat gebunden sein könnten, sondern eine bestimmte „Organisation“ voraussetzten, die sich nicht mit dem Charakter einer Flüssigkeit vertrüge. Die BRÜCKEsche Ansicht gewann bald mehrere Anhänger. Vor allem aber schien die Vorstellung von der festen Beschaffenheit des Zellinhalts gestützt zu werden durch die Lehre von dem netzförmigen Bau des Protoplasmas, wie sie FROMMANN und HEITZMANN vertraten. Man glaubte in dem Netzwerk das feste Gerüst gefunden zu haben, mit dessen Organisation die Lebensvorgänge verknüpft wären. Inzwischen hat sich aber herausgestellt, daß die netzförmige Struktur des Protoplasmas eine optische Täuschung war, und so ist der Ansicht von der festen Konsistenz des Protoplasmas die tatsächliche Grundlage wieder entzogen worden. In Wirklichkeit ist bei unseren jetzigen mikroskopischen Untersuchungsmitteln eine starke Voreingenommenheit für gewisse unhaltbare Theorien erforderlich, wenn man sich der Tatsache verschließen will, daß das Protoplasma, abgesehen von den festeren Einlagerungen, die sich in seiner Grundsubstanz befinden, sich physikalisch wie eine Flüssigkeit verhält.
Die Vorstellung, daß die Lebensvorgänge nur an ein festes Substrat, unmöglich aber an eine Flüssigkeit gebunden sein könnten, ist in der Tat nicht nur unberechtigt, sondern sogar in dieser Form unhaltbar. Sie läßt sich nicht nur durch keinen annehmbaren Grund belegen, sondern sie widerspricht sogar Tatsachen, die leicht zu beobachten sind. Es ist z. B. vollkommen unverständlich, wie bei einer mehr oder weniger starren Beschaffenheit eines Gerüst- oder Netzwerkes das Protoplasma die Fähigkeit des Strömens und Fließens besitzen könnte, die man so leicht in geeigneten Pflanzenzellen und bei Amöben beobachten kann. Ein festes Netzwerk kann unmöglich fließen in der Weise, daß die einzelnen Punkte seiner Masse fortwährend sich durcheinander mischen, wie das in den Amöben so deutlich zu sehen ist. Mag auch die Theorie von der festen Konsistenz auf den ersten Anschein dem Verhalten der formbeständigen Zellen nicht widersprechen, mit den Erfahrungen an nackten Protoplasmamassen ist sie schlechterdings unvereinbar.
So haben denn auch in neuerer Zeit verschiedene Forscher, wie BERTHOLD[82], BÜTSCHLI[83], und kürzlich besonders JENSEN[84] und RHUMBLER[85], die Auffassung von der flüssigen Natur des Zellinhalts mit Nachdruck wieder vertreten, und es dürfte wohl kaum noch einen mit den Tatsachen genügend vertrauten Forscher geben, der sich dieser Vorstellung verschließen könnte. Es genügt auch, einige wenige Tatsachen zu beobachten, um sofort von der flüssigen Konsistenz des Zellinhalts überzeugt zu sein.
Vor allen Dingen beweisend für die flüssige Natur des Protoplasmas sind die bereits erwähnten Bewegungsvorgänge. An den Protoplasmasträngen der Pflanzenzellen und in den Pseudopodien der Rhizopoden sieht man die lebendige Substanz wie das Wasser eines ruhig dahingleitenden Stromes in fließender Bewegung, bald langsamer, bald schneller und an verschiedenen Stellen mit ungleicher Geschwindigkeit, so daß sich die Teilchen fortwährend untereinander mischen, wie man das besonders leicht an den der Grundmasse des Protoplasmas eingelagerten Bestandteilen, den Granulis, Fetttröpfchen etc., beobachten kann. Wie könnte eine starre Grundmasse fließen wie das Wasser in einem Strome!
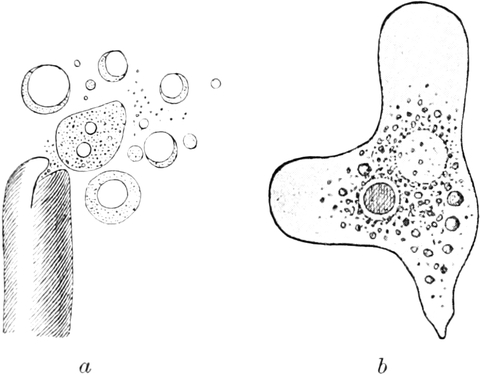
Fig. 46.
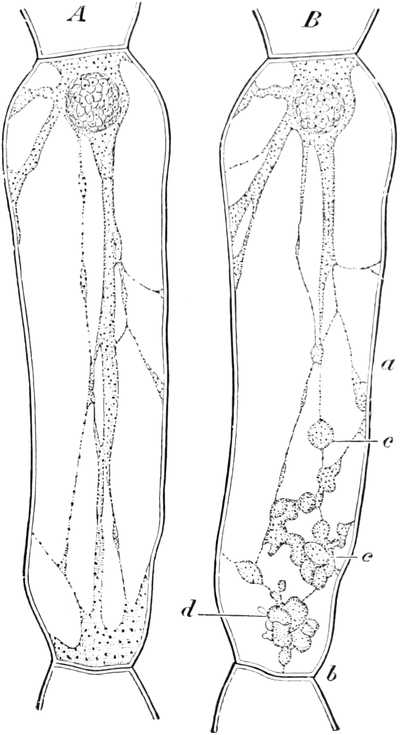
Fig. 47.
Fig. 46. a Vaucheriaschlauch, am oberen Ende angeschnitten. Das Protoplasma tritt heraus und rundet sich zu Kugeln ab. Nach PFEFFER. b Amöbenzelle mit blasser Vakuole und verschiedenen kleinen Fetttröpfchen.
Fig. 47. Tradescantia. Zelle eines Staubfadenhaares. A mit ruhig strömendem Protoplasma. B dieselbe Zelle durch den elektrischen Induktionsstrom gereizt. Das Protoplasma hat sich auf den Strängen zu einzelnen Kugeln zusammengeballt (c, d). Nach KÜHNE.
Eine andere Tatsache, die deutlich die flüssige Konsistenz des Protoplasmas erkennen läßt, ist die Tropfen- und Kugelbildung von Protoplasmamassen, die beim Zerquetschen oder Anschneiden der Zellwände aus der Zellmembran herausquellen. Solche tropfen- und kugelförmigen Zusammenballungen beobachtet man z. B. sehr schön an dem Protoplasma der Alge Vaucheria (Fig. 46 a). Aber auch an den fließenden Protoplasmasträngen der unverletzten Pflanzenzelle kann man solche kugeligen Zusammenballungen beobachten, wenn man z. B. den elektrischen Strom hindurchgehen läßt. Alsdann sammelt sich das Protoplasma zu Kügelchen und Spindelchen an, die, wenn man den Strom unterbricht, sich wieder lang ausstrecken, vermischen und ihre Substanz weiterfließen lassen (Fig. 47). Dasselbe kann man auf den Pseudopodienfäden der Meeresrhizopoden sehen, wenn man sie stark oder andauernd erschüttert (Fig. 48), und an vielen anderen Objekten ebenfalls.
Eine dritte Tatsache, die auf die flüssige Konsistenz des Protoplasmas hinweist, und die in den allerverschiedensten Zellformen beobachtet werden kann, ist die Kugel- und Tropfenform der im Protoplasma eingeschlossenen Flüssigkeitsansammlungen, wie z. B. der sogenannten Vakuolen, der Fett- und Oeltröpfchen etc., die hier und dort im Protoplasma zerstreut entstehen, wachsen und unter Umständen wieder verschwinden können (Fig. 46 b). Wäre die Grundmasse des Protoplasmas starr, so wäre es unverständlich, wie diese Flüssigkeitstropfen der verschiedensten Größe gerade immer Kugelform annehmen und dieselbe, wie die Oeltröpfchen, bei ihrer Massenzunahme beibehalten sollten. Eine Kugelform dieser Flüssigkeiten ist mechanisch nur möglich, wenn das umgebende Medium nach allen Seiten hin einen gleichen Druck ausübt und in gleichem Maße nachgibt, d. h. wenn es selbst eine Flüssigkeit ist.
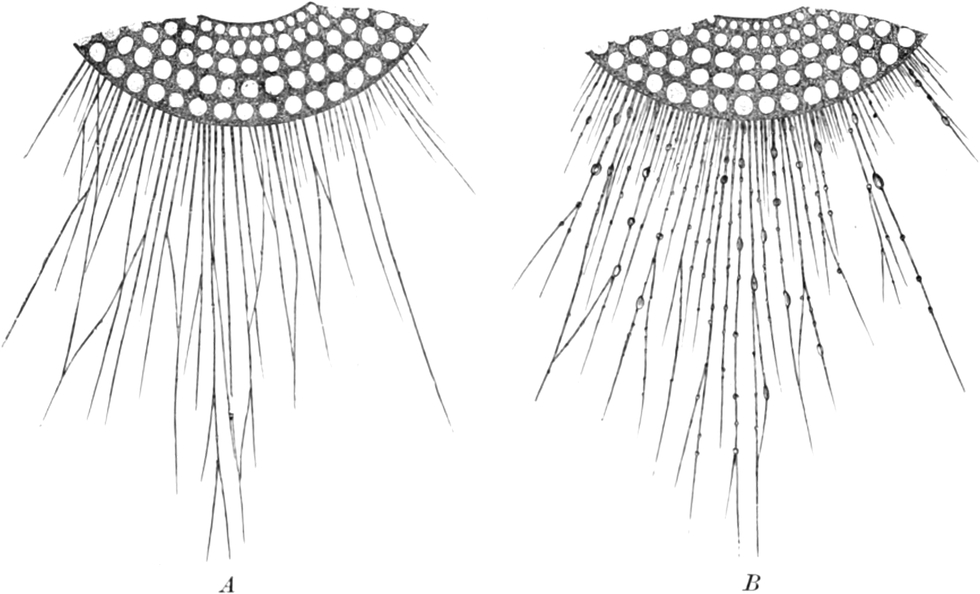
Fig. 48.
Orbitolites
. Teil der vielkammerigen Kalkscheibe des Foraminifers mit ausgestreckten Pseudopodienfäden.
A
in ungestörtem Zustande.
B
das Protoplasma der Pseudopodien hat sich auf starke Erschütterungsreize zu Kügelchen und Spindeln zusammengeballt.
Derartiger Tatsachen, die sich nur mit einem flüssigen Charakter des Protoplasmas vertragen, ließe sich eine unbegrenzte Zahl anführen. Die genannten genügen aber vollkommen, um zu zeigen, daß die Lebensvorgänge sehr wohl an ein flüssiges Substrat geknüpft sein können. Freilich sind der flüssige und der feste Zustand der Körper nicht durch eine scharfe Grenze voneinander zu trennen, sondern durch unmerkliche Uebergänge miteinander verbunden. Nach unseren physikalischen Vorstellungen beruht der Unterschied zwischen dem gasförmigen, flüssigen und festen Zustande der Körper nur darauf, daß die Moleküle im ersten Falle in rapider, im zweiten in etwas schwächerer und im letzten Falle in noch geringerer Bewegung begriffen sind. Da das also nur ein gradueller Unterschied ist, so läßt sich auch eine scharfe Grenze unmöglich ziehen. So haben wir auch in der lebendigen Substanz verschiedene Grade der Beweglichkeit der Teilchen, d. h. die lebendige Substanz ist in einem Falle leicht-, im anderen dickflüssiger. Im allgemeinen besitzt sie etwa die Konsistenz und Beweglichkeit von rohem Hühnereiweiß, doch kommen auch festere Formen vor, ja, gewisse dauernd bestehende Differenzierungen des Protoplasmas können sogar in einzelnen Fällen die schon nahe an den festen Zustand grenzende Konsistenz einer weichen Gallerte haben, ohne aber je die Verschiebbarkeit ihrer Teilchen einzubüßen. Bei Muskelfasern, Geißelfäden, Wimperhaaren, am Zellkern und an der Oberfläche mancher membranloser Protoplasmamassen, z. B. bei Infusorienzellen, haben wir derartige Verhältnisse. Nur in solchen Fällen kann man mit einiger Berechtigung von einer etwas festeren Struktur sprechen. Indessen, diese zäheren Konsistenzverhältnisse sind immer lokal in der Zelle beschränkt; die ganze übrige Masse des Zellinhalts ist stets dünner flüssig.
Schließlich dürfen wir nicht vergessen, daß die lebendige Substanz niemals eine ganz homogene Flüssigkeit ist. Vor allem ist daran zu denken, daß das Protoplasma in vielen Fällen eine äußerst feine wabige Struktur besitzt, ein Moment, das wie neuerdings RHUMBLER (l. c.) durch seine ungemein gründlichen Studien gezeigt hat, für das Verständnis mancher physikalischen Besonderheiten des lebendigen Zellinhaltes eine sehr wichtige Rolle spielt. Aber auch der Umstand ist nicht zu vernachlässigen, daß in der Flüssigkeit allerlei geformte Elemente von der verschiedensten Konsistenz aufgeschwemmt sein können, daß wir es also mit einem Gemisch oder, wie BERTHOLD es bezeichnet, mit einer „Emulsion“ zu tun haben. Aus diesem Grunde ist es nicht zweckmäßig, von einem „Aggregatzustand“ des Protoplasmas zu sprechen, wie das von vielen Forschern geschehen ist. Von einem Aggregatzustand kann streng genommen nur bei einer homogenen Substanz die Rede sein, nicht bei einem Gemisch, das Stoffe enthält, die selbst die verschiedenartigsten Aggregatphasen vorstellen. Schließlich ist immer zu berücksichtigen, daß im Lebensprozeß der Zelle fortwährend Stoffe aus einer dickflüssigeren in eine dünnflüssigere Phase, aus dem ungelösten in den gelösten Zustand übergehen und umgekehrt, so daß andauernd Mischungen und Entmischungen der Inhaltsbestandteile der lebendigen Substanz stattfinden. Vor allem scheinen in dieser Beziehung von großer Bedeutung für die Lebensvorgänge die Veränderungen zu sein, welche die kolloidalen Verbindungen des Zellinhalts unter verschiedenen Bedingungen erfahren. Die Kolloide können durch Auftreten von Salzen und ihren Ionen aus ihren Lösungen in den festen Zustand übergeführt werden und umgekehrt. Sie bilden mit den verschiedensten Stoffen Verbindungen, die im Lösungsmittel als feste Massen ausfallen. Viele dieser Verbindungen sind, wie z. B. diejenigen mit neutralen Salzen, reversibel und können durch Konzentrationsverminderung, durch Diffusion etc. wieder in kolloidale Lösungen übergehen. Gerade die kolloidalen Eigenschaften der besonders wichtigen organischen Verbindungen der lebendigen Substanz, wie der allgemein verbreiteten Körper der Eiweißgruppe, dürften in Zukunft noch mancherlei wertvolle Aufschlüsse für die feinere Analyse der Lebensvorgänge liefern, denn bisher sind nur die ersten Schritte auf diesem Gebiete getan, dessen Erforschung die physikalische Chemie erst in neuerer Zeit in Angriff genommen hat[86].
Die flüssige Natur der lebendigen Substanz ist ihre wichtigste physikalische Eigenschaft. Sie verlangt, daß die lebendige Substanz in physikalischer Beziehung den Gesetzen tropfbarer Flüssigkeiten gehorchen muß. Wir werden dementsprechend und im Gegensatz zu der Vorstellung, welche die Lebensvorgänge nur mit einer festen Organisation für vereinbar hält, gerade sehen, daß sich die Lebensäußerungen nur verstehen lassen unter der Voraussetzung eines flüssigen Zustandes ihres Substrats, d. h. eines Zustandes, in dem die Teilchen mehr oder weniger verschieblich sind. Die Gebilde, welche, wie Sehnen, Bindegewebsfasern, Zellhäute, Knochen- und Knorpelgrundsubstanz etc., eine vollkommen starre Konsistenz haben, zeigen überhaupt keine aktiven Lebensäußerungen, und der alte Satz: „corpora non agunt nisi soluta“, wenn er auch in seiner Allgemeinheit anfechtbar ist, trifft für die lebendige Substanz durchaus zu.
2. Membranfunktionen und osmotische Eigenschaften der Zelle.
Dem Besitz ihrer kolloidalen Verbindungen verdankt die lebendige Substanz eine Eigentümlichkeit, die für das gesamte Spiel der Lebensvorgänge von der allergrößten Bedeutung ist, das ist die Eigentümlichkeit, daß ihre kolloidalen Grenzflächen die Eigenschaften sogenannter „semipermeabler Membranen“ besitzen. Semipermeable Membranen sind Membranen aus kolloiden Stoffen, welche die Diffusion bestimmter Stoffe verändern[87]. Bringt man zwischen zwei diffusible Flüssigkeiten eine vollkommen permeable Scheidewand, etwa von poröser Kohle oder porösem Ton, so erfolgt der Diffusionsaustausch zwischen beiden Flüssigkeiten nach den Gesetzen der Diffusion entsprechend der Diffusionsgeschwindigkeit der beiden Flüssigkeiten. Scheidet man dagegen die beiden Flüssigkeiten voneinander durch eine semipermeable Membran aus Kollodium oder Gelatine oder Eiweiß oder irgendeinem anderen kolloidalen Material, so findet die Diffusion nicht mehr entsprechend der Diffusionsgeschwindigkeit der beiden Flüssigkeiten statt, sondern die Membran verändert die Geschwindigkeit der Diffusion und zwar in sehr verschiedener Weise für verschiedene Stoffe. Semipermeable Membranen üben also einen elektiven Einfluß auf die Diffusionsvorgänge aus. Man hat die Bedingungen für diese Tatsache darin gefunden, daß die kolloidale Substanz der Membran Lösungsmittel oder gelöste Stoffe absorbiert oder bindet, so daß Konzentrationsänderungen daraus resultieren. Damit sind zugleich die an semipermeablen Membranen auftretenden elektrischen Potentialdifferenzen verständlich, die der Elektrizitätsproduktion der lebendigen Substanz zugrunde liegen.
Das lebendige Protoplasma hat in seinen kolloidalen Bestandteilen die Eigenschaften semipermeabler Membranen. Protoplasmaoberflächen üben daher einen elektiven Einfluß auf die Diffusion bestimmter Stoffe aus. Dabei hängt das Elektionsvermögen ganz von der Zusammensetzung des Protoplasmas ab, es kann bei verschiedenen Formen der lebendigen Substanz sich auf ganz verschiedene Stoffe erstrecken. Für das Verständnis gewisser Lebensäußerungen sind besonders wichtig einige Folgen dieses Elektionsvermögens.
Füllen wir eine Flasche, die statt des Bodens eine einfache Membran, etwa aus Pergamentpapier, besitzt, mit einer konzentrierten Kochsalzlösung und schließen wir sie, nachdem sie bis zum Rande gefüllt ist, mit einem durchbohrten Gummistopfen, durch den ein senkrechtes Steigrohr geht, so können wir, wenn wir dieses System mit der Membran in eine Schale mit destilliertem Wasser tauchen, die reine Wirkung der Diffusion beobachten. Zwischen beiden durch die Membran getrennten Flüssigkeiten besteht eine große Differenz des osmotischen Druckes. Der osmotische Druck einer Lösung ist nach dem bekannten Gesetz von AVOGADRO und nach VAN ’T HOFFs klassischen Untersuchungen bei gleicher Temperatur abhängig von der Anzahl der in der Flüssigkeit enthaltenen Moleküle des gelösten Stoffes. Durch die Diffusion erfolgt nun bekanntlich eine Durchmischung der miteinander in Verbindung tretenden Flüssigkeiten so lange, bis die Differenz vollkommen ausgeglichen ist, d. h. bis beide Flüssigkeiten in allen Punkten die gleiche Zusammensetzung und Konzentration haben. Da aber Wasser durch die Membran der Flasche viel schneller hindurchtritt als Kochsalz, so wird zunächst viel mehr Wasser von der Schale in die Flasche hineintreten, als Kochsalz aus der Flasche in die Schale herausdiffundiert. Die Folge davon wird sein, daß die Flüssigkeitsmenge in der Flasche mehr und mehr zunimmt. Dementsprechend steigt der hydrostatische Druck in der Flasche, was sich an dem Steigrohr direkt bemerkbar macht. An dem hydrostatischen Druck haben wir hier einen Maßstab für den osmotischen Druck. Wäre die Flasche oben geschlossen, so würde der steigende Druck in der Flasche die Membran immer mehr nach außen vorpressen, event. bis zum Platzen. Es können durch Osmose auf diese Weise ganz bedeutende Druckwerte erzielt werden.
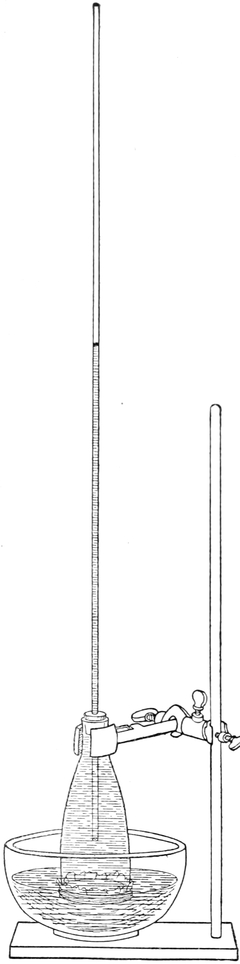
Fig. 49.
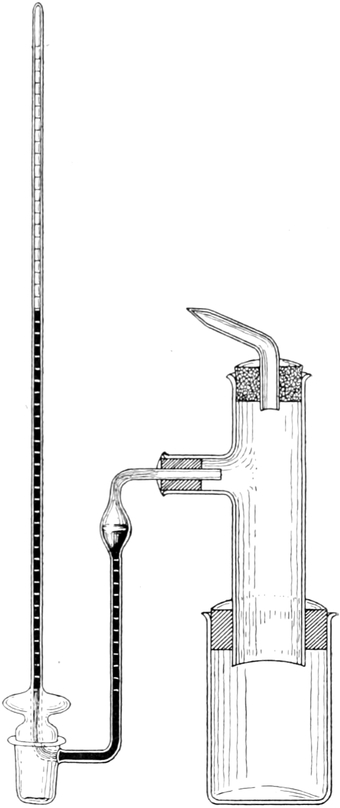
Fig. 50.
Fig. 49. Dialyseflasche mit Steigrohr. Die unten mit einer einfachen Pergamentpapiermembran verschlossene Flasche ist mit Kochsalzlösung gefüllt und mit ihrem unteren Ende in eine Schale mit Wasser gehängt.
Fig. 50. PFEFFERsche Zelle im Längsschnitt. Die Tonzelle, welche eine Niederschlagsmembran enthält, ist in ein Wassergefäß gehängt und trägt seitlich einen Tubus, der sie mit einem Manometer verbindet. Oben ist sie mittels einer zugeschmolzenen Glasröhre von der Luft abgeschlossen.
Läßt man indessen eine Dialyseflasche, wie sie hier geschildert wurde, einige Zeit stehen, so bemerkt man, daß die Flüssigkeitssäule, nachdem sie ein Maximum erreicht hatte, wieder zu sinken beginnt, weil allmählich auch immer mehr Kochsalz aus dem Innern der Flasche durch die Membran in das umgebende Wasser diffundiert. Der osmotische Druck bleibt also nicht konstant, da die Membran auch für Kochsalz durchlässig ist. Nehmen wir dagegen statt der einfachen Pergamentmembran eine halbdurchlässige Membran, die zwar Wasser aber nicht die gelöste Substanz durchläßt, so erhalten wir nach einiger Zeit einen stationären Druckwert, der nur die Höhe des osmotischen Druckes angibt. Man verfährt dazu am besten in der von PFEFFER beschriebenen Weise, indem man in einer gewöhnlichen Tonzelle, wie sie für galvanische Elemente dient, eine Niederschlagsmembran herstellt, die semipermeablen Charakter hat. Eine kleine, gut gereinigte und unter der Luftpumpe getrocknete Tonzelle wird mit einer Kupfersulfatlösung getränkt und dann in eine Ferrocyankaliumlösung getaucht. Ferrocyankalium bildet mit Kupfersulfat eine Niederschlagsmembran, die sich in den feinen Poren der Tonzelle ablagert. Nun kann man die Tonzelle abspülen, innen mit einer Kupfersulfatlösung füllen und dann in reines Wasser hängen. Um den osmotischen Druck der Kupfersulfatlösung zu bestimmen, verbindet man eine solche mit einem seitlichen Tubus versehene Tonzelle mit einem Barometer in der nebenstehend angegebenen Weise und schließt die Zelle oben luftdicht durch einen Kautschukstopfen, der eine Glasröhre trägt, die nach vollkommener Füllung der Tonzelle mit Kupfersulfatlösung abgeschlossen wird, so daß das System jetzt vollkommen geschlossen ist. Hängt man dann die Tonzelle mit ihrem unteren Teil in ein Glasgefäß mit Wasser, so beginnt nun das Wasser in die Kupfersulfatlösung hineinzudiffundieren, während das Kupfersulfat die Niederschlagsmembran der Tonzelle nicht passieren kann. Infolgedessen steigt der Druck in der Tonzelle bis zu einem Maximum an, und zwar solange, bis der Quecksilberdruck dem osmotischen Druck das Gleichgewicht hält. Dann bleibt der Druck in der Tonzelle stationär und man kann seine Größe an dem Quecksilberstande des Barometers ablesen.
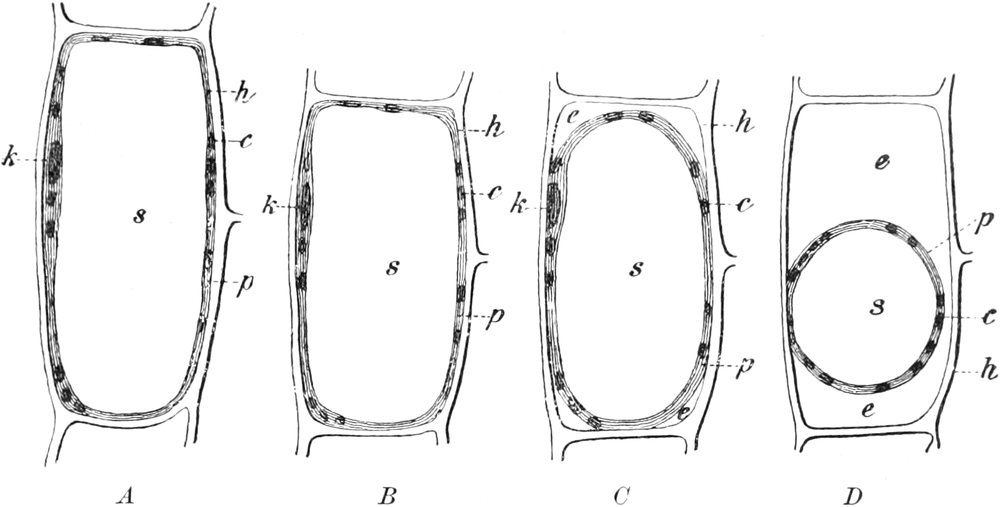
Fig. 51.
Schema des Zellturgors einer Pflanzenzelle
.
h
Zellmembran,
p
Primordialschlauch,
k
Zellkern,
c
Chlorophyllkörper,
s
Zellsaft,
e
eindringende Salzlösung. Bei
A
Zelle in voller Turgeszenz, der Primordialschlauch liegt der Zellmembran fest an. Bei
B
hat der Turgor infolge einwirkender Salzlösung abgenommen, die Zelle ist kleiner geworden, aber der Primordialschlauch liegt der Zellmembran noch an. Bei
C
ist der Turgor noch geringer geworden, der Primordialschlauch beginnt sich von der Zellhaut, die ihre geringste Größe erreicht hat, abzuheben. Bei
D
hat der Primordialschlauch sich vollständig zusammengezogen, weil die osmotische Wirkung der von außen her einwirkenden Salzlösung
e
sehr hohe Werte erreicht hat. Nach
DE
V
RIES
.
Die lebendige Zelle repräsentiert nun ein ähnliches System wie die Tonzelle im obigen Versuch. Sie kann aufgefaßt werden als eine Flüssigkeitsmasse, in der osmotisch wirksame Stoffe gelöst sind und die umgeben ist von einer semipermeablen Membran, die für Wasser gut, für die im Zellinhalt gelösten Stoffe aber gar nicht durchlässig ist. Ein ideales Paradigma dieser Verhältnisse bietet z. B. die Pflanzenzelle. Bekanntlich stellt die Pflanzenzelle eine zylindrische Kapsel vor, deren Wände von einer elastischen Zellulosehaut gebildet werden (Fig. 51). Die Zellulosehaut entspricht der Tonwand des Zylinders im obigen Versuch. Die Innenhaut der Zellulosekapsel ist mit einer dünnen aber kontinuierlichen Protoplasmaschicht, dem sogenannten „Primordialschlauch“ überzogen, der wie ein Sack oder eine Blase eine Flüssigkeit, den „Zellsaft“, umschließt und in der Regel Stränge von Protoplasma quer- und längsverzweigt mitten durch diese große Zellsaftvakuole hindurchsendet (auf der nebenstehenden schematischen Figur sind diese Protoplasmastränge fortgelassen). Der Primordialschlauch hat semipermeable Eigenschaften und entspricht der Niederschlagsmembran im obigen Versuch. Im Zellsaft gelöst sind verschiedene osmotisch wirksame Stoffe wie Salze, Zucker etc., die im Lebensprozeß der Zelle produziert werden. Sie entsprechen der Kupfersulfatlösung im obigen Versuch. Für diese Stoffe ist das Protoplasma als semipermeable Membran im normalen Zustande undurchlässig. Sie können also nicht von innen nach außen durch den Primordialschlauch hindurchdiffundieren. Dagegen kann Wasser von außen nach innen in die Zelle hineindiffundieren. Wenn also beim Stoffwechsel der Zelle mehr osmotisch wirksame Moleküle im Zellsaft aufgehäuft werden als in dem umgebenden Medium sich befinden, wird von außen solange Wasser in das Innere der Zelle hineintreten, bis die Druckdifferenzen ausgeglichen sind. Osmotische Druckdifferenzen zwischen Zellinhalt und äußerem Medium können nicht auf die Dauer bestehen, sie gleichen sich durch Diffusion immer von selbst aus, sobald sie auftreten. Im vorliegenden Falle muß daher der Druck in der Zelle durch die Wasseraufnahme steigen, d. h. der Primordialschlauch wird ausgedehnt. Aber nicht nur der Primordialschlauch, sondern auch die elastische Zellulosekapsel erfährt eine Dehnung, so daß die ganze Zelle an Volumen zunimmt. Der Druck, der auf diese Weise in der Zelle entsteht, wird als „Turgor“ der Zelle bezeichnet. Es ist klar, daß der Turgor der Zelle ganz abhängig ist von dem osmotischen Druck. Bringt man die Zelle in ein Medium, das einen geringeren osmotischen Druck hat als der Zellinhalt, das also weniger osmotisch wirksame Moleküle gelöst enthält als der Zellsaft, so wird der Turgor der Zelle durch Wasseraufnahme steigen. Infolgedessen nimmt das Volumen der Zelle zu, die Zellmembran wird gedehnt. Erhöht man umgekehrt die Zahl der osmotisch wirksamen Moleküle im Medium, so wird der Turgor der Zelle durch Wasserabgabe sinken. Die Wasserabgabe kann dabei so stark werden, daß sich der Primordialschlauch beim allmählichen Zusammenziehen ganz von der vollständig entspannten und auf ein geringeres Volumen reduzierten Zellulosekapsel abhebt (Fig. 51 D). Man spricht dann in der Pflanzenphysiologie wenig zutreffend von „Plasmolyse“. Der Turgor der Pflanzenzellen ist für die Erhaltung der Festigkeit und Widerstandsfähigkeit und dadurch der Stellung der Pflanzenteile, wie Stengel, Blätter, Blüten etc. von der größten Bedeutung. Pflanzen, in deren Zellen der Turgor sinkt, werden welk.
Noch nach einer anderen Richtung hin spielen die osmotischen Vorgänge im Leben der Zelle eine tief eingreifende Rolle. Die Osmose reguliert den Wassergehalt der lebendigen Substanz. Vom Wassergehalt aber ist wiederum die Fähigkeit der lebendigen Substanz, auf Reize zu reagieren, in engster Abhängigkeit. Jede Zellform hat einen unter normalen Verhältnissen für sie ganz spezifischen Wassergehalt, der auf osmotischem Wege bestimmt wird einerseits durch die Menge der Salze und anderen osmotisch wirksamen Stoffe, welche die Zelle enthält, und andererseits durch die Menge der osmotisch wirksamen Stoffe im umgebenden Medium. Bei ungestörtem Stoffwechsel sind diese Mengenverhältnisse konstant. Dem entspricht ein ganz bestimmter Grad der Erregbarkeit der Zelle durch Reize. Entzieht man aber auf osmotischem Wege der Zelle Wasser, so daß der Wassergehalt ihrer lebendigen Substanz sinkt, so nimmt ihre Erregbarkeit zu, steigert man umgekehrt ihren Wassergehalt über die Norm, so sinkt ihre Erregbarkeit. Das zeigt z. B. sehr deutlich der Muskel. Durchspült man einen Muskel mit einer hypertonischen Salzlösung, d. h. mit einer Salzlösung, die einen höheren osmotischen Druck hat als die normale Spülflüssigkeit des Muskels, das Blut, so rufen dieselben Reize, die vorher eben nur eine schwache Reaktion erzeugten, alsbald heftige Kontraktionen hervor. Durchspült man dagegen umgekehrt den Muskel mit einer hypotonischen Salzlösung, so wirken alsbald die stärksten Reize nicht mehr.
Schließlich dürften die osmotischen Vorgänge in der Zelle und speziell die elektiven Eigenschaften der semipermeablen Protoplasmaoberflächen einen wichtigen Faktor bilden bei der Entstehung der elektrischen Ströme, die wir unter gewissen Bedingungen an lebendigen Objekten auftreten sehen. Indem beim Zerfall elektrisch indifferenter Moleküle elektrisch positiv und elektrisch negativ geladene Atome resp. Atomgruppen, die „Kationen“ und „Anionen“ entstehen, und indem die semipermeablen Membranen die eine Ionenart leichter durchlassen als die andere, ist stets Gelegenheit zur Entstehung elektrischer Potentialdifferenzen an verschiedenen Stellen eines lebendigen Objektes gegeben. Es ist aber kaum zweifelhaft, daß sich in Zukunft noch zahlreiche andere Vorgänge im Zellleben werden auffinden lassen, die von den Verhältnissen der Osmose und den Eigenschaften der Protoplasmaflächen als semipermeabler Membranen in tiefeinschneidender Weise beherrscht werden.
3. Das spezifische Gewicht der lebendigen Substanz.
Unter den physikalischen Eigenschaften der lebendigen Substanz besitzt ferner für das Verständnis gewisser Lebensäußerungen ihr spezifisches Gewicht eine bemerkenswerte Bedeutung. Wenn man Zellen der verschiedensten Art oder möglichst reine Gewebestücke in destilliertes Wasser fallen läßt, so beobachtet man fast ganz allgemein, daß sie im Wasser zu Boden sinken. Es stellt sich also heraus, daß der Zellinhalt als Ganzes im allgemeinen spezifisch schwerer ist als Wasser, d. h. ein größeres spezifisches Gewicht besitzt als 1. JENSEN[88] hat vor einiger Zeit eine etwas genauere Bestimmung des spezifischen Gewichts der einzelligen Wimperinfusorienform Paramaecium aurelia ausgeführt, und zwar in folgender Weise. Bekanntlich kann man durch Zusatz von löslichen Salzen das spezifische Gewicht einer Flüssigkeit erhöhen und durch Steigerung der Konzentration sehr fein abstufen. JENSEN setzte also die Paramäcien in eine schwache Lösung von Kaliumkarbonat, deren Konzentration er so lange erhöhte, bis die Paramäcien darin eben nicht mehr zu Boden sanken, sondern mitten in der Lösung schweben blieben, ein Zeichen, daß jetzt die Lösung dasselbe spezifische Gewicht besaß, wie die Paramäcienkörper. Dann wurde mittelst eines Aräometers das spezifische Gewicht der Lösung bestimmt, und so fand sich, daß der Zellkörper der Paramäcien ein spezifisches Gewicht von ungefähr 1,25 besitzt. Im allgemeinen dürfte wohl das spezifische Gewicht der lebendigen Substanz überhaupt nicht viel höhere Werte aufweisen. Soweit bis jetzt Erfahrungen vorliegen, handelt es sich immer nur um Werte, die wenig größer sind als 1.
Allein, es gibt gewisse Fälle, in denen das Gesamtgewicht der Zelle Abweichungen von diesem allgemeinen Verhalten zeigt, in denen die Zelle als Ganzes spezifisch leichter ist als 1. Diese Fälle sind ohne weiteres verständlich, wenn wir uns wieder erinnern, daß das Protoplasma keine homogene Substanz ist. Vergegenwärtigen wir uns z. B. Zellen, bei denen Fetttröpfchen in der Grundsubstanz des Protoplasmas eingelagert sind, so ist es möglich, daß, obwohl die Grundsubstanz spezifisch schwerer ist als Wasser, doch die Zelle als Ganzes ein geringeres spezifisches Gewicht besitzt, wofern nur die Ansammlung des Fettes, das spezifisch bedeutend leichter ist als Wasser, eine solche Größe erreicht, daß sie die Schwere des übrigen Protoplasmakörpers überwiegt. Solche Fälle sind realisiert in den Fettzellen des Unterhautbindegewebes beim Menschen und vielen Tieren, die, wenn man sie ins Wasser wirft, an der Oberfläche schweben bleiben. Fettleibige Menschen haben aus diesem Grunde beim Schwimmen geringere Anstrengungen zu machen, um sich über Wasser zu erhalten, als magere. Dieselbe Rolle wie das Fett können im Zellkörper noch andere Stoffe spielen, vor allem Gasblasen, die das spezifische Gewicht des Gesamtkörpers der Zelle unter Umständen enorm herabsetzen können, ein Verhältnis, das z. B. bei manchen schalentragenden Rhizopoden des Süßwassers (Arcella, Difflugia) vorkommt.
Es ergibt sich aus dieser Tatsache, daß die Zelle durch Anhäufung leichterer oder schwererer Stoffe ihr spezifisches Gewicht unter Umständen aktiv verringern oder erhöhen und dadurch ohne Benutzung irgendwelcher Lokomotionsorgane aktiv im Wasser aufsteigen oder niedersinken kann, eine Fähigkeit, die für das Leben der betreffenden Organismen unter manchen Verhältnissen, z. B. wenn an der Stelle, an der sie leben, die Lebensbedingungen ungünstig werden, von großer Bedeutung ist. In allen Fällen aber, wo man Zellen findet, die spezifisch leichter sind als Wasser, sind immer nur bestimmte Bestandteile, niemals das ganze Protoplasma, spezifisch leichter. Die Grundmasse des Protoplasmas scheint stets um ein Geringes schwerer zu sein als Wasser.
4. Die optischen Eigenschaften der lebendigen Substanz.
Werfen wir schließlich noch einen flüchtigen Blick auf die optischen Eigenschaften der lebendigen Substanz, so finden wir, daß das Protoplasma in den meisten Fällen durchaus farblos, grau, in dünnen Schichten, die von geformten Einschlüssen frei sind, durchscheinend, in dicken Schichten undurchsichtig ist, und das Licht etwas stärker bricht als Wasser.
Im einzelnen verhalten sich aber die mannigfaltigen Formen der lebendigen Substanz je nach der Beschaffenheit ihrer Bestandteile verschieden. Einzelne geformte Elemente, wie Fetttröpfchen, Wassertropfen, Chlorophyllkörner, können intensiv gefärbt sein, so daß die Zellen, in denen sie in größerer Anhäufung vorhanden sind, gelb, rot, grün etc. gefärbt sind, wie z. B. bei den Pflanzengeweben. Ebenso ist das Lichtbrechungsvermögen der einzelnen Bestandteile verschieden, das der Wassertröpfchen in den Vakuolen geringer, das der Fetttröpfchen größer als das der Grundsubstanz. Im Leben der Zelle spielen diese Farbstoffe unter Umständen eine bedeutende Rolle, insofern sie Licht- und Wärmeeinwirkungen in bestimmter Weise regulieren, wie das namentlich in weitgehendem Maße im Pflanzenleben der Fall ist. Es würde zu weit führen, auf alle einzelnen Fälle einzugehen, doch ist es von Interesse, das Verhalten einer Form der lebendigen Substanz, nämlich das der sogenannten kontraktilen Substanz, d. h. derjenigen Substanz, die, wie das amöboide Protoplasma, die Flimmerhaare und die Muskelfasern, bestimmte Formveränderungen (Kontraktionen) ausführt, näher ins Auge zu fassen.
Bereits in der ersten Hälfte des 19. Jahrhunderts fand BOECK, daß gewisse Bestandteile der quergestreiften Muskelfaser doppelbrechend sind, d. h. das Vermögen haben, einen Lichtstrahl zu zerlegen in zwei Strahlen, die beide mit verschiedener Geschwindigkeit fortgepflanzt werden, eine Fähigkeit der Muskelsubstanz, die besonders BRÜCKE später genauer untersuchte. Seitdem hat ENGELMANN[89] die Beobachtung gemacht, daß nicht nur diese Schichten des quergestreiften Muskels, sondern überhaupt alle faserig differenzierten kontraktilen Substanzen, wie die der glatten und quergestreiften Muskelzellen, der kontraktilen Fasern oder Myoide des Infusorienkörpers, sowie der Wimperhaare und Geißelfäden aller Flimmerzellen, positiv einachsig doppelbrechend sind, und zwar in der Weise, daß ihre optische Achse mit der Faserrichtung zusammenfällt. Diese Tatsache weist darauf hin, daß die Molekularstruktur aller dieser Fasergebilde in der Faserrichtung eine andere sein muß als in den übrigen Richtungen, eine Folgerung, die für das Verständnis der Kontraktionsvorgänge an diesen Objekten vielleicht Bedeutung besitzt. An dem nackten kontraktilen Protoplasma der Rhizopoden, z. B. der Amöben, hat ENGELMANN keine Doppelbrechung auffinden können. Nur auf den graden, strahlenförmigen Pseudopodien von Aktinosphaerium Eichhornii, einem zierlichen Süßwasserrhizopoden, beobachtete er Doppelbrechung, die aber hier höchst wahrscheinlich nicht von dem kontraktilen Protoplasma herrührt, sondern von starren Strahlen, die sich als Stützorgane in der Achse der Pseudopodien befinden und nachweislich mit der Kontraktion nichts zu tun haben.
** *
Fassen wir schließlich die Hauptpunkte von allem, was unsere eingehende Untersuchung ergeben hat, zu einem übersichtlichen Bilde von der lebendigen Substanz zusammen, so können wir sagen: Die lebendige Substanz, wie sie jetzt auf der Erdoberfläche existiert, tritt nur auf in Form von teils einzeln lebenden, teils zu größeren zusammenhängenden Staaten vereinigten Elementarorganismen, den Zellen. Jede Zelle ist ein meist mikroskopisch kleines Klümpchen flüssiger Substanz, in der verschiedene, teils geformte, teils gelöste Bestandteile eingelagert sind. Als allgemeine Zellbestandteile, die in allen Zellen zu finden sind, können nur die dickflüssige Grundmasse selbst, das Protoplasma, und eine darin eingelagerte, etwas festere Substanz, der Zellkern, betrachtet werden. Ein Klümpchen Protoplasma mit einem Kern ist bereits eine vollständige Zelle und anderseits gibt es keine Zelle, die nicht Kern und Protoplasma besäße. Ebenso, wie sich morphologisch in der lebendigen Zellsubstanz die verschiedensten Bestandteile nebeneinander unterscheiden lassen, ebenso sind in der lebendigen Substanz auch die verschiedensten chemischen Körper vorhanden. Die Elementarstoffe, aus denen die lebendige Substanz besteht, sind nur solche, wie sie auch in der unbelebten Körperwelt existieren, doch ist ihre Zahl eine geringe, und es sind hauptsächlich die Elemente mit niedrigstem Atomgewicht, welche die lebendige Substanz zusammensetzen. Ein besonderes Lebenselement existiert nicht. Dagegen sind viele Verbindungen, zu denen diese Elementarstoffe zusammentreten, für die lebendige Substanz charakteristisch und finden sich nicht in der anorganischen Welt. Vor allem sind es die Eiweißkörper, die kompliziertesten unter allen organischen Verbindungen, die aus den Elementen C, H, O, N, S bestehen und in keiner lebendigen Substanz fehlen. Daneben kommen noch andere komplizierte organische Verbindungen, wie Kohlehydrate, Fette und einfachere Stoffe vor, die sämtlich entweder aus dem Zerfall der Eiweißkörper stammen oder zu ihrem Aufbau notwendig sind, sowie schließlich anorganische Stoffe, wie Salze und Wasser. Die Eiweißkörper verleihen zugleich der lebendigen Substanz der Zelle ihre kolloidalen Eigenschaften und der Zelloberfläche die Eigentümlichkeiten semipermeabler Membranen. Das Wasser ferner gibt der lebendigen Substanz ihre flüssige Konsistenz, mit der das Leben untrennbar verknüpft ist. Die Salze endlich regulieren auf osmotischem Wege den Wassergehalt und damit die Erregbarkeit der Zelle.
Das ist in groben Zügen das Bild, das uns die anatomische, die mikroskopische, die chemische und die physikalische Untersuchung der lebendigen Substanz ergeben hat.
II. Lebendige und leblose Substanz.
Noch ist aber unsere Vorstellung von der lebendigen Substanz unfertig. Wir haben zwar ein Bild von ihrer Zusammensetzung bis in alle jetzt bekannten Einzelheiten hinein gewonnen, aber uns fehlt zum Gesamtbilde noch ein Punkt, ja, der wesentlichste Punkt. Worin liegt der charakteristische Unterschied zwischen lebendiger und lebloser Substanz? Die Frage ist inhaltsschwer, denn sie enthält nichts Geringeres als das Problem der ganzen Physiologie, jenes gewaltige Problem, das seit alter Zeit schon manchen grübelnden Geist unwiderstehlich gefesselt hat, und das noch heute den Forscher zwingt, seine Lebensarbeit der Lösung des alten Rätsels zum Opfer zu bringen: das Problem des Lebens.
Wie wir schon früher sahen, ist der Begriff des Lebens nicht immer derselbe gewesen. Seit seiner Entstehung bei den Urvölkern hat er sich mannigfaltig verändert. Versuchen wir, ob es gelingt, den Begriff in wissenschaftlicher Weise zu fixieren, indem wir die Unterschiede zwischen lebendiger und lebloser Substanz aufsuchen.
Dieses Unternehmen muß sich naturgemäß nach zwei Richtungen hin erstrecken, einmal auf die Unterschiede zwischen Organismen und anorganischen Stoffen, dann aber auch auf die Unterschiede zwischen lebendigen und leblosen Organismen, denn offenbar unterscheiden wir scharf zwischen Objekten, die niemals lebendig waren, wie z. B. einem Stein, und solchen, die gelebt haben und leblos geworden sind, also z. B. einer Leiche.
A. Organismen und anorganische Körper.
1. Morphologische Unterschiede.
Man hat bei der Vergleichung der Organismen mit den anorganischen Substanzen mit Vorliebe den Fehler begangen, den Organismus einem Kristall gegenüberzustellen, statt ihn mit einer Substanz zu vergleichen, die ähnliche Konsistenz, überhaupt ähnliche physikalische Verhältnisse bietet wie die lebendige Substanz, also etwa mit einer dickflüssigen Masse. Aus diesem fehlerhaften Vergleich ist dann eine Reihe von Unterschieden entnommen worden, deren Unhaltbarkeit auf der Hand liegt.
So hat man gesagt, indem man die Kristalle im Auge hatte: Die anorganischen Körper haben nach einfachen mathematischen Gesetzen konstruierte Formen mit genau bestimmten Winkeln, Ecken und Kanten, während die Organismen mathematisch nicht darstellbare Körpergestalten besitzen. Man braucht nicht gerade das „kristallisierte Menschenvolk“ zu zitieren, das MEPHISTOPHELES in seinen Wanderjahren gesehen hat; die Unhaltbarkeit dieser Unterscheidung wird von selbst klar, wenn man daran denkt, daß einerseits wirklich auch unter den Organismen mathematisch sehr einfache Körperformen vorkommen, wie unter den Rhizopoden bei den mit so überaus zierlichen Kieselskeletten versehenen Radiolarien sowie bei vielen polyedrisch aneinandergedrängten Gewebezellen oder schließlich bei vollkommen kugelförmigen Eizellen, und daß anderseits in der anorganischen Natur sämtlichen Flüssigkeiten die mathematisch feste Körperform abgeht.
Man hat ferner behauptet: Die anorganischen Körper, wie die Kristalle, haben keine Organe, ein Besitz, der dagegen sämtliche Organismen kennzeichnet. Auch das ist nicht richtig. Es gibt nicht nur Organismen ohne eigentliche Organe, wie die Amöben oder noch besser die roten Blutzellen, bei denen der ganze flüssige Protoplasmakörper selbst Organ für alles ist, es gibt auch anorganische Gebilde mit wirklichen Organen, wie die Maschinen, bei denen die einzelnen Teile eine ganz bestimmte Funktion versehen, und dennoch wird niemand im Ernste die Blutzellen für anorganische Körper oder die Dampfmaschinen für lebendige Organismen halten.
Einen anderen Unterschied wollte man darin finden, daß die Organismen im Gegensatz zu allen anorganischen Körpern zusammengesetzt sind aus den charakteristischen Elementarbausteinen aller lebendigen Substanz, den Zellen. Es ist richtig, daß die Zelle ein spezifisches Element der gesamten Organismenwelt ist. Aber was diesen Elementarbestandteil der lebendigen Welt charakterisiert, was ihn unterscheidet von der ganzen anorganischen Welt, ist nicht seine bloße morphologische Abgrenzung. Objekte, die aus gesonderten Formelementen zusammengesetzt sind, können wir auch aus anorganischen Stoffen mit Leichtigkeit herstellen, und solche Objekte hat die Natur in großem Maßstabe hergestellt in den Gesteinen, die, wie der Granit, aus einem Gemenge von lauter isolierten Kristallen bestehen. Was die Zelle charakterisiert, sind vielmehr ihre chemischen Eigenschaften. Durchgreifende morphologische Unterschiede liefert uns dieses Moment nicht.
Man hat schließlich gesagt: die anorganischen Körper besitzen eine sehr einfache gleichmäßige Struktur, die Organismen dagegen eine hochkomplizierte „Organisation“. Sobald man unter „Organisation“ nur den mehr oder weniger komplizierten Aufbau der Organismen aus verschiedenartigen Elementarbausteinen, den Zellen, versteht, trifft das innerhalb gewisser Grenzen zu, wenn auch der Unterschied einem zusammengesetzten Gestein gegenüber dann immer nur ein gradueller wäre. Aber wir müssen ja eben schon die einzelne Zelle zum Vergleich heranziehen, denn sie ist selbst bereits ein vollkommener Organismus. Will man aber den Begriff der komplizierten „Organisation“ auf die Zelle anwenden, so kann man damit nur die große morphologische Mannigfaltigkeit und chemische Komplikation ihrer Inhaltsbestandteile meinen, und eine solche können wir im Reagenzglas bei komplizierten chemisch-physikalischen Gemischen ebenfalls herstellen. Versteht man dagegen unter „Organisation“ eine besondere Art der Aneinanderfügung der einzelnen Inhaltsbestandteile, wie sie in der anorganischen Natur nicht vorkäme, so enthält der Begriff mehr oder weniger ein Stück Mystik, die freilich vielfach noch immer für die Erklärung der Lebensvorgänge beliebt ist. Wir können aber diesem Vorgang in der Wissenschaft nicht folgen, denn Wissenschaft und Mystik schließen sich aus.
Wir sehen: wesentliche Unterschiede liefert uns die Vergleichung der Bauverhältnisse von lebendiger und anorganischer Substanz nicht, und wenn wir nicht durchaus der Neigung nachgeben, die lebendige Substanz immer nur mit dem Kristall zu vergleichen, sondern mit flüssigen Gemischen, so finden wir, daß sie sich in ihren Bauverhältnissen nicht mehr von leblosen Flüssigkeitsgemischen unterscheidet, wie diese untereinander, ja nicht einmal so sehr wie diese von einem Kristall.
2. Genetische Unterschiede.
Eine zweite Reihe von Unterschieden, die man zwischen Organismen und anorganischen Stoffen zu finden geglaubt hat, bezieht sich auf die Fortpflanzung und Abstammung. Allein auch diese Unterschiede sind durchaus nicht prinzipieller Natur, und es bedarf keiner tiefen Ueberlegung, um zu erkennen, wie in ihnen kein wirklicher Gegensatz zwischen beiden Körpergruppen begründet ist.
Es ist als charakteristisches Unterscheidungsmerkmal der Organismen angesehen worden, daß sie sich fortpflanzen, während den anorganischen Körpern die Fortpflanzungsfähigkeit fehlt. Darin liegt aber wieder kein durchgreifender Unterschied, denn wir kennen ganze Reihen von Organismen, welche leben und sich trotzdem nicht einmal fortpflanzen können. So geht bekanntlich den sogenannten „Arbeiterinnen“, jenen mit verkümmerten Geschlechtsorganen versehenen Individuen im Ameisen- und Bienenstaat, die sogar die große Hauptmasse des ganzen Staates bilden, die Fortpflanzungsfähigkeit zeitlebens ab, und dennoch können wir nicht umhin, sie als lebendige Organismen zu bezeichnen. Ferner aber, wenn wir zusehen, worin eigentlich die Fortpflanzung bei den Organismen besteht, so finden wir, daß es lediglich eine Abgabe einer gewissen Menge von Körpersubstanz ist, eine Teilung des eigenen Leibes. Am deutlichsten, d. h. am wenigsten durch begleitende Nebenumstände verdeckt, zeigt sich diese Tatsache bei den einzelligen Organismen. Eine Amöbe z. B. schnürt sich einfach in zwei Hälften auseinander, und jede von beiden Hälften lebt als neue Amöbe weiter. Besteht aber die Fortpflanzung im wesentlichen nur in einer einfachen Teilung der Substanz, so existiert kein prinzipieller Unterschied zwischen der Teilung einer lebendigen Zelle und eines anorganischen Körpers. Ein Wassertropfen, der an einer Dachrinne hängt und sich allmählich vergrößert, zerreißt jedesmal, wenn er eine bestimmte Größe erreicht hat, und teilt sich in zwei neue Tropfen, die immer wieder Wassertropfen sind.
Allein man hat gesagt: Die Organismen stammen stets von anderen Organismen ab, während die anorganischen Körper sowohl von Organismen wie auch von anorganischen Körpern abstammen können. So gelinge es nicht, auch nur den einfachsten Organismus künstlich aus anorganischen Stoffen zusammenzusetzen, während es nicht schwer sei, anorganische Körper, z. B. das Wasser, auf die verschiedenste Weise sowohl aus organischen wie aus anorganischen Stoffen zu gewinnen. Das erscheint in der Tat als ein durchgreifender Unterschied, denn es ist wahr, daß es trotz aller Bemühungen nicht gelungen ist, zu zeigen, daß Organismen aus anorganischen Stoffen entstehen können, weder in der Natur noch im Laboratorium. Dennoch kann auch diese Unterscheidung bei genauerem Zusehen nicht als wirklich durchgreifend anerkannt werden. Man kann nämlich zunächst einwenden, daß ja im Pflanzenkörper fortwährend organische Substanz aus anorganischen Stoffen gebildet wird, denn die Pflanze baut ihren Körper ausschließlich aus anorganischen Stoffen auf. Aber darauf hat man erwidert, daß diese Entstehung von organischer Substanz aus anorganischer nur unter Mithilfe von lebendigen Organismen möglich ist, und PREYER[90] hat gesagt: die Organismen unterscheiden sich von den anorganischen Körpern eben dadurch, daß sie immer schon die Existenz von lebendiger Substanz voraussetzen. Allein auch in dieser Form gilt die Unterscheidung höchstens für unsere jetzige Zeit. Der Satz VIRCHOWs: „omnis cellula e cellula“, der die im Laufe der Zeit notwendig gewordene Verallgemeinerung des alten HARVEYschen Satzes: „omne vivum ex ovo“ vorstellt, hat nur Gültigkeit für die Verhältnisse, die jetzt auf der Erdoberfläche herrschen. Das liegt auf der Hand. Gehen wir nämlich zurück in der Erdentwicklung, so kommen wir bald in eine Zeit, wo die Erde noch eine Temperatur hatte, bei der keine Zelle existieren konnte. Die Zellen müssen also irgendwann einmal aus Stoffgemengen entstanden sein, die keine Zellen waren. An diesem Punkt angelangt, stehen wir aber vor folgender Alternative. Entweder sind, wie die „Urzeugungslehre“ annimmt, die Organismen irgend einmal aus anorganischen Stoffen entstanden, oder der Begriff des Lebens muß, wie die „Theorie von der Kontinuität des Lebens“ fordert, auch noch auf die Körper angewendet werden, aus denen die Zellen sich entwickelt haben, wenn sie auch noch von der lebendigen Substanz der heutigen Organismen gänzlich verschieden waren. Nimmt man das erstere an, so fällt der Unterschied in der Abstammung der beiden Körpergruppen von selbst fort, denn dann stammt nicht bloß die anorganische, sondern auch die organische Natur von lebloser Substanz ab. PREYER entschließt sich daher zu der zweiten Annahme, indem er auch die Stoffgemenge, aus denen die Zellen sich entwickelt haben, ja sogar schließlich die ganze glühende Masse des Erdballs selbst als lebendig betrachtet, und sagt, den Satz HARVEYs noch weiter ausdehnend: „omne vivum e vivo“, womit er ausdrücken will, daß das Leben von Ewigkeit her existiert hat und niemals entstanden ist. Indessen, auch damit ist die Schwierigkeit, die sich einer durchgreifenden Unterscheidung der Organismen und anorganischen Körper auf Grund ihrer Abstammung entgegenstellt, nicht beseitigt. Konsequent seiner Vorstellung, daß die ganze glühende Masse, die den Erdball einst bildete, als lebendig zu betrachten sei, nimmt nämlich PREYER an, daß das Anorganische aus dem Organischen entstanden sei. Dann aber ist es klar, daß der oben aufgestellte Unterschied in der Abstammung der beiden großen Körpergruppen ebenfalls in sich zusammenfällt, denn dann setzt nicht nur die organische, sondern auch die anorganische Natur die Existenz von lebendiger Substanz voraus. Wir sehen also, daß auch bei einer Erweiterung des Lebensbegriffs, wie sie PREYER fordert, der Unterschied in der Abstammung für die frühere Zeit der Erdentwicklung nicht aufrecht erhalten werden kann.
Ebensowenig wie in der Fortpflanzung und Abstammung von seinesgleichen besteht in der Entwicklung des Organismus ein durchgreifender Unterschied gegenüber den anorganischen Körpern. Unter Entwicklung verstehen wir eine Reihe von Veränderungen des Organismenkeimes, die ihn schließlich seinen Erzeugern wieder ähnlich machen. Indessen, solche Veränderungen kommen in der anorganischen Natur ebenfalls vor und sind durchaus nicht fundamental davon unterschieden. Schmelzen wir z. B. ein Stück Schwefel in einem Tiegel über dem Feuer und schütten wir die geschmolzene Masse in Wasser aus, so bekommen wir eine zähe, braune, gummiartige Substanz, die mit dem Stück Schwefel, von dem sie stammt, nicht die geringste äußere Aehnlichkeit hat. Lassen wir sie aber einen oder zwei Tage liegen, so wird sie allmählich fester und härter, ihre braune Farbe verblaßt und macht einer gelblichen Platz, bis die ganze Masse nach einiger Zeit wieder das Aussehen des gewöhnlichen gelben, harten Schwefels hat. Hier hat das Stück Schwefel eine Entwicklung durchlaufen, die es dem ursprünglichen Stück, von dem es abstammte, wieder ähnlich gemacht hat. Aber auch für die Organismen ist die Entwicklung durchaus kein durchgreifendes Unterscheidungsmerkmal, denn es gibt Organismen, die leben, ohne sich zu entwickeln, z. B. die Amöben. Hier sind, nachdem die Amöbe sich in zwei Teilhälften zerschnürt hat, beide Teile schon ohne weiteres wieder vollständige Amöben und unterscheiden sich von dem ursprünglichen Individuum, von dem sie abstammen, nur durch ihre Größe.
Man hat schließlich auch in der Art des Wachstums einen Unterschied zwischen Organismen und anorganischen Substanzen zu begründen gesucht, jedoch mit ebenso wenig Erfolg. Zur Aufstellung dieses Unterschiedes hat wieder die unglückliche Gegenüberstellung des Organismus und des Kristalls geführt. Man sagte: der Kristall wächst durch „Apposition“, der Organismus dagegen durch „Intussuszeption“ der Teilchen, d. h. der Kristall wächst, indem sich an seiner Oberfläche ein Teilchen nach dem anderen anlagert, wobei das Innere fest und unverändert bleibt, der Organismus dagegen, indem die Teilchen in das Innere aufgenommen und zwischen die schon vorhandenen zwischengelagert werden. Wenn man eine Zelle als Ganzes einem Kristall gegenübergestellt, ist das in der Tat nicht zu bestreiten; allein nicht alle anorganischen Körper sind Kristalle, und wir sahen bereits, daß wir die lebendige Substanz der Organismen ihren physikalischen Eigenschaften nach im wesentlichen nur mit einer flüssigen Masse in Vergleich setzen dürfen. Flüssigkeiten aber wachsen stets nur durch Intussuszeption in ihr Inneres, d. h. wenn man zu einer Flüssigkeit einen löslichen Körper hinzusetzt, etwa Salz zu Wasser, so löst das Wasser das Salz auf und lagert die Salzmoleküle durch Diffusion von selbst zwischen seine eigenen Wassermoleküle hinein. Hier haben wir also genau denselben Vorgang wie beim Wachstum des Organismus.
Die Vergleichung der genetischen Verhältnisse von Organismen und anorganischen Körpern liefert daher ebensowenig einen prinzipiellen Unterschied zwischen beiden, wie die Betrachtung der morphologischen Verhältnisse, und wir sind wieder gezwungen, weiter zu suchen.
3. Physikalische Unterschiede.
Eine dritte Gruppe von Unterschieden, die zwischen Organismen und anorganischen Körpern behauptet worden sind, umfaßt die Vorgänge der Bewegung. Die Bewegung, jene augenfälligste unter den Lebensäußerungen, galt schon in früher Zeit als ein charakteristisches Merkmal für das Leben, und die Naturvölker sahen, in konsequenter Weise diese Unterscheidung durchführend, dementsprechend auch Wind und Welle als lebendige Wesen an. Indessen, wir bezeichnen jetzt das wogende Meer nicht mehr als einen lebendigen Organismus und kennen andererseits in den ruhenden Pflanzensamen etc. Zustände von Organismen, die nicht die geringste Bewegung erkennen lassen, ohne doch tot zu sein. So ist in unserer Zeit der Unterschied der Bewegung in seiner primitiven Form fallen gelassen worden. Dafür sind speziellere Verhältnisse in den Bewegungsvorgängen als unterscheidende Merkmale zwischen Organismen und anorganischen Körpern angesprochen worden, sofern sich beide überhaupt bewegen.
Man glaubte einen Unterschied in den „Ursachen“ erblicken zu müssen, die einerseits die Bewegungen der Organismen, anderseits die Bewegungen der anorganischen Körper erzeugen. Die ersteren, wie die Muskelbewegungen, sollten durch „innere Ursachen“ veranlaßt werden, die ihren Sitz im Organismus selbst haben, die letzteren, wie das Treiben der Wogen und Wolken, durch „äußere Ursachen“, die wie der Wind von außen her auf das Objekt einwirken. Sehen wir ab von dem unglücklichen Ursachenbegriff, den wir verworfen haben, so hatte man hier mehr oder weniger bewußt die mystische „Lebenskraft“ vor Augen. Wir haben uns indessen schon früher von der Nichtexistenz einer besonderen „Lebenskraft“ überzeugt, und dementsprechend läßt sich auch der Unterschied in den „Ursachen“ der Bewegung nicht in dieser Weise aufrecht erhalten. Im übrigen dürfte eine scharfe Grenze zwischen inneren und äußeren „Ursachen“ in vielen Fällen auch schwer zu ziehen sein. Denkt man z. B. nicht gerade an Wind und Wellen, sondern an eine Dampfmaschine, so läßt sich in der Tat hier mit demselben Rechte wie vom Organismus sagen: sie arbeitet aus „inneren Ursachen“, denn die Dampfspannung, die den Stempel treibt und die Räder in Bewegung setzt, befindet sich im Inneren ihres Dampfkessels.
Allein man hat gesagt, der Unterschied zwischen den bewegenden Faktoren in der Dampfmaschine und im Organismus bestehe darin, daß die Dampfmaschine dennoch nicht arbeiten könne, wenn sie nicht von außen geheizt würde, während der Organismus von selbst arbeite. Das ist aber schlechterdings falsch. Auch der Organismus muß geheizt werden, wenn er in Tätigkeit, d. h. am Leben bleiben soll, genau so wie die Dampfmaschine. Seine Heizung besteht in der Zufuhr von Nahrung. Ja, die Analogie zwischen der Heizung der Dampfmaschine und der Ernährung des Organismus geht sogar sehr weit. Die kohlenstoffhaltige Nahrung wird im Organismus verbrannt, wie die Kohlen in der Dampfmaschine, d. h. die Nahrungsstoffe werden mit dem durch die Atmung aufgenommenen Sauerstoff oxydiert, allerdings in etwas anderer Weise, als die Kohle oxydiert wird, aber wir bekommen in beiden Fällen als Endprodukt Kohlensäure. Wird die Zufuhr der Nahrung unterbrochen, so hört die Tätigkeit des Organismus nach einiger Zeit, wenn alle aufgenommene Nahrung verbraucht ist, ebenso auf wie die der Dampfmaschine: in beiden erlischt die Bewegung.
Als ein allgemeines Charakteristikum aller Organismen gegenüber den anorganischen Körpern hat man schließlich die „Irritabilität“ bezeichnet. Wir haben bei unserem Ueberblick über die Entwicklungsgeschichte der physiologischen Forschung gesehen, daß mit dem Worte Irritabilität anfangs sehr unklare Vorstellungen verbunden wurden, und müssen daher, um Mißverständnisse zu verhüten, den Begriff in einer bestimmteren Form definieren. Wir können dann nur ganz allgemein sagen: Irritabilität ist die Fähigkeit eines Körpers, auf äußere Einwirkungen mit irgendeiner Veränderung seines Zustandes zu reagieren, wobei die Größe der Reaktion zu der Größe der Einwirkung in keinem bestimmten Maßverhältnis steht. In der Tat ist eine solche Irritabilität oder Reizbarkeit Allgemeingut sämtlicher lebendigen Substanz, sei es, daß der Organismus mit Steigerung oder mit Herabsetzung oder gar Stillstand seiner Lebensäußerungen auf die äußere Einwirkung antwortet. Allein diese Irritabilität ist wieder kein ausschließlicher Besitz der Organismen, denn auch leblose Stoffe sind irritabel und antworten auf äußere Einwirkungen mit bestimmten Veränderungen, z. B. mit Produktion bestimmter Stoffe oder Energieformen, wobei die Größe der Produktion durchaus nicht immer mit der Größe des äußeren Anstoßes in einem bestimmten Verhältnis steht. Das deutlichste Beispiel dafür liefern die explosiblen Stoffe. Das Nitroglyzerin zerfällt bei einer Erschütterung unter gewaltiger Energieentwicklung in Wasser, Kohlensäure, Sauerstoff und Stickstoff, antwortet also mit einer enormen Produktion von Energie und mit einer entsprechenden stofflichen Veränderung auf die äußere Einwirkung. Auch die Irritabilität ist demnach kein durchgreifendes Merkmal für die Unterscheidung von Organismen und anorganischen Körpern, und wir sehen, daß uns die dynamischen Verhältnisse ebensowenig wie die morphologischen und genetischen feste Anhaltspunkte für die Aufstellung eines prinzipiellen Gegensatzes zwischen Organismen und anorganischen Stoffen bieten. Suchen wir noch weiter.
4. Chemische Unterschiede.
Erst bei der Vergleichung der chemischen Verhältnisse gewinnen wir endlich einen Unterschied zwischen Organismen und anorganischen Körpern.
Freilich haben wir gesehen, daß ebensowenig, wie es eine besondere „Lebenskraft“ gibt, im Organismus ein eigenes „Lebenselement“ existiert. Die chemischen Elemente, die den Organismus zusammensetzen, kommen ohne Ausnahme auch in der anorganischen Natur vor. Einen prinzipiellen Gegensatz von organischer und anorganischer Substanz, d. h. einen Gegensatz, der in einer elementaren Verschiedenheit beider Körperwelten beruht, werden wir also auch auf chemischem Gebiet nicht erwarten dürfen. Aber es existiert ein Unterschied in der Art der Verbindungen, zu denen die Elemente zusammentreten. Wir sahen, daß in der lebendigen Substanz chemische Verbindungen vorhanden sind, wie die Eiweißkörper, Kohlehydrate und Fette, die nirgends in der anorganischen Körperwelt vorkommen. Was aber das Wichtigste ist, das ist die Tatsache, daß Eine Gruppe von diesen chemischen Körpern, die Eiweißkörper, allen Organismen ohne Ausnahme zukommt. Wie es einerseits keinen einzigen Organismus gibt, sei er lebendig oder tot, in dem die Eiweißkörper fehlten, so gibt es andererseits kein einziges anorganisches System in der Natur, in dem ein auch nur annähernd ähnlicher Stoff vorhanden wäre. Der Besitz des hochkomplizierten Eiweißmoleküls ist in der Tat ein durchgreifendes Unterscheidungsmerkmal des Organismus gegenüber allen anorganischen Körpern.
Man ist aber noch weiter gegangen und hat einen durchgreifenden Unterschied zwischen Organismen und anorganischen Körpern nicht nur in der Existenz bestimmter Verbindungen, sondern auch in der Art und Weise von Anordnung und Aufeinanderfolge der chemischen Vorgänge im tätigen Organismus finden wollen. Man hat gesagt: Die lebendige Substanz ist charakterisiert durch ihren „Stoffwechsel“, indem bestimmte Verbindungen fortwährend entstehen, wieder zerfallen, ihre Zerfallsprodukte nach außen abgeben und auf Kosten der von außen als Nahrung aufgenommenen Stoffe wieder neu entstehen, so daß ein fortwährender Stoffstrom durch die lebendige Substanz geht, der durch den Aufbau und den Zerfall der betreffenden Verbindungen bedingt ist. In der Tat ist der „Stoffwechsel“ ein überaus charakteristischer Vorgang für den lebendigen Organismus, und wir werden später sehen, daß auf ihm das Leben beruht, aber er ist nur ein Vorgang, der den lebendigen Organismus vom leblosen unterscheidet, nicht von der anorganischen Substanz, denn er ist durchaus nicht auf die Organismen beschränkt, sondern kommt auch im Reiche anorganischer Körper vor. Ein einfaches Beispiel dafür gibt uns das Verhalten der Salpetersäure bei der Produktion der „englischen Schwefelsäure“. Bringt man nämlich Salpetersäure mit dem Anhydrid der schwefligen Säure zusammen, das bei der Schwefelsäurefabrikation durch Rösten von Schwefelerzen gewonnen wird, so entzieht die schweflige Säure der Salpetersäure Sauerstoff, indem sie selbst in Schwefelsäure übergeht, während aus der Salpetersäure Stickoxyd und Stickstoffdioxyd wird. Wird nun für den fortdauernden Zutritt von frischer Luft und Wasser gesorgt, so wird aus dem Stickoxyd und Stickstoffdioxyd immer wieder Salpetersäure neugebildet, und diese gibt einen Teil ihres Sauerstoffs wieder an neue Massen schwefliger Säure ab, so daß das Molekül der Salpetersäure fortwährend durch Sauerstoffabgabe in niedere Oxyde zerfällt und sich durch Sauerstoffaufnahme wieder herstellt. Auf diese Weise kann mit derselben Quantität Salpetersäure eine unbegrenzte Menge von schwefliger Säure in Schwefelsäure übergeführt werden. Hier haben wir also in einfacherer Form, d. h. an einer einfachen chemischen Verbindung, eine Aufeinanderfolge von Zerfall und Neubildung einer Substanz unter Aufnahme und Abgabe von Stoffen, also einen regelrechten Stoffwechsel, der im Prinzip bis in die Einzelheiten hinein dem Stoffwechsel der Organismen entspricht, und doch ist die Salpetersäure eine anorganische Verbindung.
Derartige Vorgänge, die, wie neuere Erfahrungen gezeigt haben, viel verbreiteter sind in der anorganischen Natur als man früher annahm, gestatten es nicht, daß wir das Vorhandensein eines Stoffwechsels an sich als Unterschied zwischen lebendigen Organismen und anorganischen Körpern hinstellen.
** *
Blicken wir hiernach noch einmal zurück auf das Ergebnis unserer Vergleichung, so finden wir, daß ein durchgreifender Unterschied zwischen lebendigen Organismen und anorganischen Systemen nur in der Art der chemischen Verbindungen besteht, die in beiden getroffen werden. Gegenüber der Gesamtheit aller anorganischen Körper besteht das gemeinsame Charakteristikum der Organismen nur in dem ausnahmslosen Besitz gewisser hochkomplizierter chemischer Verbindungen, vor allem der Eiweißkörper. Darin liegt aber kein prinzipieller, kein elementarer Gegensatz zwischen beiden Körpergruppen. Im Gegenteil, die elementare Analyse zeigt uns in beiden die gleichen Elemente. Wo man daher irgendeinen allgemein durchgreifenden Gegensatz zwischen lebendigen Organismen und anorganischen Systemen findet, da hat man die Analyse noch nicht bis zu Ende geführt[91].
B. Lebendige und leblose Organismen.
1. Leben und Scheintod.
In Indien, dem alten Lande des Wunders und der Zauberei, ist, wie es scheint, schon seit langer Zeit der Glaube verbreitet, daß manche Menschen, namentlich einzelne „Fakire“, die im Geruch besonderer Heiligkeit stehen, die wunderbare Fähigkeit besitzen, ihr Leben willkürlich auf längere Zeit vollkommen zu sistieren, um später ungestört und unverändert ihr entbehrungsvolles und selbstquälerisches Dasein fortzusetzen. Eine große Reihe solcher Fälle, in denen sich die betreffenden Fakire angeblich in diesem Zustand des suspendierten Lebens haben begraben und nach einer bestimmten Zeit wieder haben ausgraben lassen, ist von Reisenden aus Indien berichtet worden, und JAMES BRAID[92], der bekannte Entdecker der hypnotischen Zustände, hat einige der am besten beglaubigten Fälle gesammelt und nach Angabe der Zeugen berichtet. Einer von diesen Fällen, der als Typus gelten darf, ist folgender: Am Hofe des RUNJEET SINGH war in einem viereckigen Gebäude, das in der Mitte einen ringsherum geschlossenen Raum besaß, ein Fakir, der sich willkürlich in den leblosen Zustand versetzt hatte, in einen Sack eingenäht und eingemauert worden, wobei die einzige Tür des Raumes mit dem Privatsiegel des RUNJEET SINGH versiegelt worden war. (Ein dichter Abschluß der Luft fand also nach dem Berichte zu urteilen ebensowenig statt, wie in allen anderen überlieferten Fällen.) RUNJEET SINGH, der selbst nicht an die wunderbaren Fähigkeiten der Fakire glaubte, hatte, um jeden Betrug auszuschließen, außerdem noch einen Kordon seiner eigenen Leibwache um das Gebäude gelegt, vor dem vier Posten aufgestellt waren, die zweistündlich abgelöst und fortwährend revidiert wurden. Unter diesen Bedingungen blieb der Fakir sechs Wochen in seinem Grabe. Ein Engländer, der als Augenzeuge dem ganzen Vorgange beiwohnte, berichtet über die nach sechs Wochen erfolgte Ausgrabung folgendes: Als man das Gebäude in Gegenwart des RUNJEET SINGH eröffnete, zeigte sich, daß das Siegel und die ganze Vermauerung unversehrt war. In dem dunklen Raum des Gebäudes, der bei Lichtschein untersucht wurde, lag in einem ebenfalls mit unversehrtem Siegel verschlossenen Kasten der Sack mit dem Fakir. Der Sack, der ein verschimmeltes Aussehen zeigte, wurde geöffnet und die zusammengekauerte Gestalt des Fakirs herausgeholt. Der Körper war völlig steif. Ein anwesender Arzt stellte fest, daß nirgends am Körper eine Spur von Pulsschlag zu bemerken war. Inzwischen übergoß der Diener des Fakirs dessen Kopf mit warmem Wasser, legte einen heißen Teig auf seinen Scheitel, entfernte das Wachs, mit dem die Ohren- und Nasenlöcher fest zugeklebt waren, öffnete gewaltsam mit einem Messer die fest aufeinandergepreßten Zähne, zog die nach hinten umgebogene Zunge hervor, die immer wieder in ihre Stellung zurückschnellte, und rieb die geschlossenen Augenlider mit Butter. Alsbald fing der Fakir an, die Augen zu öffnen, der Körper begann konvulsivisch zu zucken, die Nüstern wurden aufgeblasen, die vorher steife und runzelige Haut nahm allmählich ihre normale Fülle wieder an, und wenige Minuten später öffnete der Fakir die Lippen und fragte mit matter Stimme den RUNJEET SINGH: „Glaubst Du mir nun?“
Aehnliche Fälle werden von mehr oder weniger zuverlässigen Zeugen in großer Zahl berichtet. Ein ganz analoger Fall ist ferner auch in Europa beobachtet worden und von BRAID ebenfalls zitiert. Es ist der bekannte Fall des Oberst TOWNSEND, von dem uns Dr. CHEYNE, ein auch in wissenschaftlichen Kreisen bekannter Arzt aus Dublin, erzählt: „Er konnte nach Belieben sterben, d. h. aufhören zu atmen, und durch bloße Willensanstrengung oder sonstwie wieder ins Leben zurückkommen. Er drang so sehr in uns, den Versuch einmal anzusehen, daß wir schließlich nachgeben mußten. Alle drei fühlten wir erst den Puls; er war deutlich fühlbar, obwohl schwach und fadenförmig, und sein Herz schlug normal. Er legte sich auf den Rücken zurecht und verharrte einige Zeit regungslos in dieser Lage. Ich hielt die Hand, Dr. BAYNARD legte seine Hand aufs Herz und Herr SKRINE hielt ihm einen reinen Spiegel vor den Mund. Ich fand, daß die Spannung des Pulses allmählich abnahm, bis ich schließlich auch bei sorgfältigster Prüfung und bei vorsichtigstem Tasten keinen mehr fühlte. Dr. BAYNARD konnte nicht die geringste Herzkontraktion fühlen und Herr SKRINE sah keine Spur von Atemzügen auf dem breiten Spiegel, den er ihm vor den Mund hielt. Dann untersuchte jeder von uns nacheinander Arm, Herz und Atem, konnte aber selbst bei der sorgfältigsten Untersuchung auch nicht das leiseste Lebenszeichen an ihm finden. Wir diskutierten lange, so gut wir es vermochten, diese überraschende Erscheinung. Als wir aber fanden, daß er immer noch in demselben Zustande verharrte, schlossen wir, daß er doch den Versuch zu weit geführt habe, und waren schließlich überzeugt, daß er wirklich tot sei und wollten ihn nun verlassen. So verging eine halbe Stunde. Gegen 9 Uhr früh (es war im Herbst), als wir weggehen wollten, bemerkten wir einige Bewegungen an der Leiche und fanden bei genauerer Beobachtung, daß Puls- und Herzbewegung allmählich zurückkehrten. Er begann zu atmen und leise zu sprechen. Wir waren alle auf das Aeußerste über diesen unerwarteten Wechsel erstaunt und gingen nach einiger Unterhaltung mit ihm und untereinander von dannen, von allen Einzelheiten des Vorgangs zwar völlig überzeugt, aber ganz erstaunt und überrascht und nicht imstande, eine vernünftige Erklärung dafür zu geben.“