Viertes Kapitel. Von den allgemeinen Lebensbedingungen. (continued 2)
Reading edition
Das Verdienst, den gesunden Kern aus der absurden Hülle der früheren Urzeugungsideen herausgeschält und in einen rein wissenschaftlichen Boden verpflanzt zu haben, gebührt HAECKEL. Für ihn ist die Frage, ob jetzt noch lebendige Substanz durch Urzeugung irgendwo entsteht oder nicht, indifferent[305]. Heute, mehr als 40 Jahre später, nachdem die Kenntnis der niedrigsten Organismen und ihrer Fortpflanzung eine so enorme Entwicklung durchgemacht hat, ist die größte Mehrzahl der Forscher geneigt, diese Frage in negativem Sinne zu beantworten. Dagegen hat HAECKEL als der erste in voller Schärfe den Schluß gezogen, daß die lebendige Substanz zu irgend einem Zeitpunkt der Erdentwicklung einmal aus leblosen Substanzen entstanden sein muß, weil es eine Zeit gab, zu der die Erde sich in einem Zustand befand, der jedes organische Leben ausschloß. Dieser Zeitpunkt kann nach HAECKEL nicht früher datiert werden, als zu einer Zeit, in der sich der in der Atmosphäre ringsum suspendierte Wasserdampf in tropfbar-flüssiger Form niedergeschlagen hatte. Worauf HAECKEL ferner den größten Wert legt, ist die Annahme, daß die durch Urzeugung entstandenen Organismen noch keine Zellen, sondern die niedrigsten und einfachsten Organismen gewesen sein müssen, die wir uns vorstellen können, „vollkommen homogene, strukturlose, formlose Eiweißklumpen“. Diese lebendigen Klümpchen kann man sich entstanden denken aus der Wechselwirkung der im Urmeere gelösten Substanzen. Eine eingehende Erörterung aber über das „Wie“ der Entstehung weist HAECKEL ausdrücklich zurück: „Jede irgendwie ins einzelne eingehende Darstellung der Autogonie ist vorläufig schon deshalb unstatthaft, weil wir uns durchaus keine irgendwie befriedigende Vorstellung von dem ganz eigentümlichen Zustande machen können, den unsere Erdoberfläche zurzeit der ersten Entstehung der Organismen darbot.“ Von den überaus einfachen und niedrigen, durch Urzeugung entstandenen Organismen, die HAECKEL eben ihrer Einfachheit wegen als „Moneren“ bezeichnet, stammen dann durch lückenlose Deszendenz die Zellen und sämtliche Organismenformen ab, die heute noch die Erdoberfläche bevölkern.
Das ist im wesentlichen die Urzeugungslehre in ihrer heutigen Form. Aber so einfach und einleuchtend ihre Schlußfolgerung auch ist, so hat sie doch von mehreren Seiten Widerspruch erfahren und zur Aufstellung anderer Theorien über die Herkunft des Lebens auf der Erde Veranlassung gegeben.
2. Die Lehre von den Kosmozoen.
Die Theorie von den im Weltenraume umhertreibenden lebensfähigen Keimen niederer Organismen, oder, wie PREYER sie kurz genannt hat, von den „Kosmozoen“, war die erste Vorstellung, die sich in neuerer Zeit zur Urzeugungslehre in einen Gegensatz stellte. Ihr Begründer war H. E. RICHTER[306]. Ausgehend von der Vorstellung, daß sich überall im Weltenraum kleine Partikel fester Substanz umhertreiben, die bei dem raschen Dahinfliegen der Weltkörper von diesen fortwährend abgestreift werden, nimmt RICHTER an, daß gleichzeitig mit diesen festen Teilchen und an ihnen haftend, auch dauernd lebensfähige Keime von Mikroorganismen von solchen Weltkörpern, die bewohnt sind, abgeschleudert werden und auf andere Weltkörper gelangen. Kommen solche Keime auf Weltkörper, deren Entwicklungszustand gerade günstige Lebensbedingungen, besonders mäßige Wärme und Feuchtigkeit, aufweist, so beginnen sie hier sich zu entwickeln und werden Ausgangspunkt für eine reiche Organismenwelt. Irgendwo im Weltenraume, meint RICHTER, hat es immer Weltkörper gegeben, auf denen Leben existierte, und zwar in Form vom Zellen. Die Existenz von lebendigen Zellen in der Welt ist eine ewige. „Omne vivum ab aeternitate e cellula“, sagt RICHTER, indem er den alten HARVEYschen Satz nach VIRCHOWs Vorgange in neuer Weise modifiziert. Das organische Leben ist also niemals entstanden, sondern nur immer von einem Weltkörper auf den anderen übertragen worden. Das Problem von der Herkunft des Lebens auf der Erde heißt daher nach RICHTER gar nicht: wie ist das Leben auf der Erde entstanden? sondern: wie ist es von anderen Weltkörpern auf die Erde gelangt? Und diese Frage beantwortet er durch die Theorie von den Kosmozoen.
Für die Möglichkeit, daß lebensfähige Keime vom Weltenraum her durch die Atmosphäre auf die Erdoberfläche gelangen, ohne dabei durch die infolge der enormen Reibung entstehende Glühhitze zugrunde zu gehen, glaubt RICHTER eine Stütze zu finden in der Beobachtung, daß in manchen Meteorsteinen Spuren von Kohle, ja, sogar Humus und petroleumartige Stoffe vorkommen sollen. Wenn diese, ohne zu verbrennen, auf unsere Erde gelangen könnten, dann wäre es in der Tat möglich, daß auch lebensfähige Keime die Atmosphäre passieren, ohne ihre Lebensfähigkeit einzubüßen.
Daß organische Keime eine längere Reise durch den Weltraum von einem Himmelskörper auf den anderen ohne Wasser und ohne Nahrung vertragen können, dürfen wir in keinem Falle bezweifeln, kennen wir doch in den eingetrockneten Organismen, die sich, wie ja auch die Sporen von Mikroorganismen, im Zustande des latenten Lebens befinden, in der Tat lebensfähige Substanz, die sehr lange Zeit ohne Wasser und ohne Nahrung in ihrem leblosen Zustande verharren kann, um wieder zu neuem Leben zu erwachen, sobald sie unter die erforderlichen Lebensbedingungen gerät.
Unabhängig von RICHTER haben HELMHOLTZ und WILLIAM THOMSON einige Jahre später die Frage erörtert, ob das Leben nicht etwa von anderen Himmelskörpern auf unsere Erde übertragen worden sei, und beide haben diese Ansicht als nicht unwissenschaftlich bezeichnet. HELMHOLTZ[307] sagt: „Die Meteorsteine enthalten zuweilen Kohlenwasserstoffverbindungen; das eigene Licht der Kometenköpfe zeigt ein Spektrum, welches dem des elektrischen Glimmlichtes in kohlenwasserstoffhaltigen Gasen am ähnlichsten ist. Kohlenstoff aber ist das für die organischen Verbindungen, aus denen die lebenden Körper aufgebaut sind, charakteristische Element. Wer weiß zu sagen, ob diese Körper, die überall den Weltraum durchschwärmen, nicht auch Keime des Lebens ausstreuen, so oft irgendwo ein neuer Weltkörper fähig geworden ist, organischen Geschöpfen eine Wohnstätte zu gewähren! Und dieses Leben würden wir sogar vielleicht dem unseren im Keime verwandt halten dürfen, in so abweichenden Formen es sich auch den Zuständen seiner neuen Wohnstätte anpassen möchte.“ Daß Meteorite Träger solcher Keime sein könnten, hält HELMHOLTZ für durchaus möglich, da große Meteorsteine nur an ihrer Oberfläche stark erhitzt werden, wenn sie die Atmosphäre der Erde passieren, während sie in ihrem Innern kühl bleiben. HELMHOLTZ sagt ferner über die Kosmozoentheorie: „Ich kann nicht dagegen rechten, wenn jemand diese Hypothese für unwahrscheinlich im höchsten oder allerhöchsten Grade halten will. Aber es erscheint mir ein vollkommen richtiges wissenschaftliches Verfahren zu sein, wenn alle unsere Bemühungen scheitern, Organismen aus lebloser Substanz sich erzeugen zu lassen, daß wir fragen, ob überhaupt das Leben je entstanden, ob es nicht ebenso alt wie die Materie sei, und ob nicht seine Keime, von einem Weltkörper zum anderen herübergetragen, sich entwickelt hätten, wo sie günstigen Boden gefunden.“ „Die richtige Alternative ist offenbar: Organisches Leben hat entweder zu irgendeiner Zeit angefangen zu bestehen, oder es besteht von Ewigkeit.“
3. PREYERs Theorie von der Kontinuität des Lebens.
Durch Ueberlegungen anderer Art ist PREYER[308] zu einer Theorie über die Abstammung des Lebens gelangt, die sich sowohl zu der Urzeugungslehre als zu der Kosmozoentheorie in Gegensatz stellt.
PREYER kann sich zur Annahme der Urzeugungstheorie nicht entschließen auf Grund folgender Betrachtung. Wenn man annimmt, daß zu irgendeiner Zeit der Erdentwicklung einmal lebendige Substanz aus lebloser durch Urzeugung entstanden sei, dann müßte man fordern, daß das auch heutzutage noch möglich sei. Das hat aber das Fehlschlagen der unzähligen Menge darauf gerichteter Versuche im höchsten Grade unwahrscheinlich gemacht. Nimmt die Urzeugungslehre dagegen an, daß die Urzeugung nur einmal in grauer Vergangenheit möglich war, aber jetzt nicht mehr vorkommt, so ist das ebenso unwahrscheinlich, „denn dieselben Bedingungen, welche zur Erhaltung des Lebens erforderlich und jetzt verwirklicht sind, mußten notwendig auch bei der supponierten Entstehung des Lebendigen aus anorganischen Körpern verwirklicht sein, sonst hätte das Produkt der Urzeugung nicht am Leben bleiben können“. Man begriffe also nicht recht, was jetzt fehlen sollte, wenn doch die Urzeugung in unserer Zeit nicht mehr möglich ist.
Die Kosmozoentheorie kann PREYER ebensowenig anzunehmen sich entschließen, weil er darin nicht eine Lösung, sondern nur eine Vertagung des Problems sieht, d. h. eine Verschiebung von unserer Erde auf irgendeinen anderen Weltkörper, bei der aber das Problem immer noch bestehen bleibt.
Von der durch induktive Erfahrung gewonnenen Tatsache ausgehend, daß alle Organismen stets von anderen Organismen abstammen, die ihnen ähnlich waren, daß bis jetzt niemals durch Beobachtung die elternlose Entstehung eines Organismus festgestellt werden konnte, wirft PREYER daher die Frage auf, ob nicht etwa das Problem der Urzeugung auf einer falschen Fragestellung beruhe, wenn es verlangt, daß die lebendige Substanz einst aus lebloser entstanden sein soll; ob nicht vielmehr umgekehrt die Frage lauten muß: ist vielleicht die leblose Substanz aus der lebendigen hervorgegangen? Alle Organismen stammen immer nur wieder von anderen lebendigen Organismen ab; die anorganische, leblose Substanz dagegen sehen wir noch heute fortwährend nicht bloß von anderer lebloser Substanz, sondern auch von lebendigen Organismen abstammen, von denen sie als tote Masse ausgeschieden wird, oder von denen sie nach dem Tode übrig bleibt. PREYER stellt daher der Urzeugungslehre die Theorie gegenüber, daß das Primäre die lebendige Substanz sei, und daß die leblose Substanz aus der lebendigen Substanz erst sekundär durch Ausscheidung hervorgegangen sei[309]. Er fordert dazu, daß die Kontinuität in der Abstammung der lebendigen Substanz niemals unterbrochen worden sei. „Wer die Reihe der aufeinanderfolgenden Generationen der Organismen durch die Setzung einer Generation ohne vorhergegangene Eltern unterbricht, wer also die Kontinuität des Lebens leugnet, macht sich der Willkür schuldig.“ „Omne vivum e vivo.“ Dieser Erfahrungssatz hat nach PREYER niemals eine einzige Ausnahme erlitten.
Sehr interessant sind die Konsequenzen, die sich aus dieser Auffassung ergeben. Wenn das Leben auf der Erde niemals aus leblosen Stoffen entstanden ist, sondern immer wieder von lebendigen Substanzen abstammte, so muß auch schon Leben existiert haben, als die Erde noch ein glühender Körper war. Diesen Schluß zieht PREYER in der Tat. Er muß deshalb den Lebensbegriff bedeutend weiter fassen, als es gewöhnlich geschieht, und nicht bloß die heutige lebendige Substanz als lebendig betrachten, sondern auch glühend-flüssige Massen, wie sie zu jener Zeit allein existierten, denn von protoplasmatischen Organismen, wie sie heute leben, konnte zu jener Zeit noch keine Rede sein. „Wenn man sich aber losmacht“, sagt PREYER, „von dem ganz und gar willkürlichen und faktisch durch nichts wahrscheinlich gemachten Gedanken, als ob nur Protoplasma von der Beschaffenheit des gegenwärtigen leben könnte, und von dem alten, durch nichts als Bequemlichkeit im Denken genährten Vorurteil, als wenn zuerst nur Anorganisches existiert hätte, dann wird man den einen großen Schritt weiter nicht scheuen, auch die einstmalige Urzeugung fallen zu lassen und die Anfangslosigkeit der Lebensbewegung anzuerkennen. Omne vivum e vivo!“
Auf Grund dieser Betrachtung entwirft PREYER etwa folgendes Bild von der Abstammung des Lebens auf der Erde. Ursprünglich war die ganze feurig-flüssige Masse des Erdkörpers ein einziger riesiger Organismus. Die mächtige Bewegung, in der sich seine Substanz befand, war sein Leben. Als aber der Erdkörper anfing, sich abzukühlen, da schieden sich die Stoffe, welche bei jener Temperatur nicht mehr in flüssiger Form verharren konnten, wie etwa die schweren Metalle, als feste Massen aus und bildeten, da sie nicht mehr an der Lebensbewegung des Ganzen teilnahmen, die tote, anorganische Substanz. So entstanden die ersten anorganischen Massen. Dieser Prozeß schritt fort. Zunächst waren es immer noch feurig-flüssige Massen, welche das Leben des Erdkörpers gegenüber der anorganischen Masse repräsentierten. „Dann erst, als auch diese Kombinationen im Laufe der Zeit an der Oberfläche der Erdkugel erstarrten, d. h. starben und ausstarben, kamen Verbindungen der bis dahin noch gasig und tropfbar-flüssig gebliebenen Elemente zustande, die nun nach und nach dem Protoplasma, der Basis des Lebendigen unserer Tage, immer ähnlicher wurden. Immer kompliziertere Verbindungen, chemische Substitutionen, immer dichtere Körper, immer mehr verwickelte, ineinandergreifende Bewegungen sich näher aneinanderlagernder Teile mußten mit der Temperaturabnahme und Verminderung der Dissoziationen eintreten, und hierbei erst konnten die durch die fortschreitende Differenzierung möglichen, sich gleichenden Anfangsformen des Pflanzen- und Tierreiches von Dauer sein.“
„Wir sagen also nicht, daß das Protoplasma als solches von Anfang der Erdbildung an war, auch nicht, daß es als solches anfangslos anderswoher von außen aus dem Weltraum auf die abgekühlte Erde einwanderte, noch weniger, daß es sich aus anorganischen Körpern auf dem Planeten ohne Leben zusammengesetzt habe, wie es der Urzeugungsglaube will, sondern wir behaupten, daß die anfangslose Bewegung im Weltall Leben ist, daß das Protoplasma notwendig übrig bleiben mußte, nachdem durch die intensivere Lebenstätigkeit des glühenden Planeten an seiner sich abkühlenden Oberfläche die jetzt als anorganisch bezeichneten Körper ausgeschieden worden waren, ohne daß sie wegen fortschreitender Temperaturabnahme der Erdhülle in die nach und nach auch an Masse abnehmenden heißen Flüssigkeiten wieder eintreten konnten. Die schweren Metalle, einst auch organische Elemente, schmolzen nicht mehr, gingen nicht wieder in den Kreislauf zurück, der sie ausgeschieden hatte. Sie sind die Zeichen der Totenstarre vorzeitiger gigantischer glühender Organismen, deren Atem vielleicht leuchtender Eisendampf, deren Blut flüssiges Metall und deren Nahrung vielleicht Meteoriten waren.“
4. PFLÜGERs Vorstellung.
In einer der gedankenreichsten Arbeiten[310] der physiologischen Literatur hat PFLÜGER schon vor längerer Zeit sehr eingehend die Frage nach der Herkunft des Lebens auf der Erde erörtert, wobei er ebenfalls die Ansicht der Urzeugungslehre vertritt, daß die lebendige Substanz auf der Erde selbst aus leblosen Substanzen entstanden sei. Was aber die PFLÜGERschen Ideen besonders auszeichnet, das ist, daß sie das Problem speziell mit Rücksicht auf chemische Verhältnisse erörtern und etwas tiefer in seine Einzelheiten zu verfolgen bemüht sind.
Den Angelpunkt von PFLÜGERs Untersuchung bilden die chemischen Eigenschaften des Eiweißes als desjenigen Körpers, mit dem das Wesen allen Lebens untrennbar verbunden ist. Es existiert, sagt PFLÜGER, ein fundamentaler Unterschied zwischen dem toten Eiweiß, wie wir es etwa im Eiereiweiß haben, und dem „lebendigen Eiweiß“, wie es die lebendige Substanz aufbaut, das ist die Selbstzersetzung des letzteren. Alle lebendige Substanz zersetzt sich dauernd in gewissem Maße von selbst und in größerem Umfange auf äußere Einwirkungen hin, während das tote Eiweiß unter günstigen Bedingungen unbegrenzte Zeit unzersetzt bleibt. Als die wesentlichste Bedingung für die große Zersetzbarkeit des lebendigen Eiweißes betrachtet nun PFLÜGER, wie schon früher HERMANN[311], die intramolekulare Einfügung des Sauerstoffs in das Eiweißmolekül, der von ihm fortwährend durch die Atmung von außen her aufgenommen wird. Daß der Sauerstoff die Zersetzbarkeit bedingt, schließt PFLÜGER daraus, daß bei der Zersetzung fortwährend Kohlensäure gebildet wird, und daß die Kohlensäure nicht etwa durch direkte Oxydation des Kohlenstoffs und einfache Abspaltung des Kohlensäuremoleküls aus dem lebendigen Eiweiß hervorgehend zu denken ist, sondern durch innere Umlagerung der Atome und Trennung der neuen Atomgruppen voneinander. Daß aber die lebendige Substanz den Sauerstoff schon vorher im lebendigen Molekül gebunden enthalten muß, so daß er bei der Zersetzung nur eine Umlagerung erfährt, ist daraus zu schließen, daß Muskeln, wie HERMANN fand, länger als einen Tag in einer sauerstofffreien Atmosphäre leben und dabei immer noch Kohlensäure ausatmen können, obwohl aus ihnen kein Sauerstoff ausgepumpt werden kann. Wie schließlich durch die Einfügung des Sauerstoffs ein stabileres organisches Molekül in einen labileren Zustand übergeführt wird, das wird klar, wenn man daran denkt, daß dadurch die Möglichkeit gegeben wird, die Atome des Kohlenstoffs und Wasserstoffs durch intramolekulare Umlagerung zu Kohlensäure und Wasser zu oxydieren. Die Zersetzbarkeit muß dadurch enorm gesteigert werden, denn die Affinität des Kohlenstoffs und Wasserstoffs zum Sauerstoff ist eine sehr große. Kohlensäure und Wasser aber treten, sobald sie durch innere Umlagerung in einem Molekül entstanden sind, als selbständige stabile Moleküle aus. So ist also, nach PFLÜGERs Anschauung, die große Neigung der lebendigen Substanz zum Zerfall wesentlich durch die Menge des intramolekularen Sauerstoffs bedingt.
Indem PFLÜGER weiterhin eine Betrachtung darüber anstellt, welche Konstitution etwa das lebendige Eiweißmolekül habe, und vor allem durch welche Atomgruppen es sich vom Molekül des toten Eiweißes unterscheide, gelangt er zu der Hypothese, daß das lebendige Eiweißmolekül charakterisiert sei durch den Besitz des Cyanradikals (CN). PFLÜGER findet nämlich bei einem Vergleich der stickstoffhaltigen Zersetzungsprodukte des lebendigen Eiweißes mit den entsprechenden Zersetzungsprodukten des toten Eiweißes, die man bei künstlicher Spaltung das letzteren erhält, daß beide fundamental verschieden sind. Die charakteristischen Zersetzungsprodukte des lebendigen Eiweißes, wie Harnstoff, Harnsäure, Kreatin etc.[312], seien durch künstliche Spaltung des toten Eiweißes niemals zu gewinnen. Und diese so charakteristischen Stoffe enthielten entweder selbst das Cyanradikal oder sie könnten aus Cyanverbindungen durch Umlagerung der Atome künstlich hergestellt werden, wie z. B. Harnstoff aus cyansaurem Ammon (WÖHLER). Das weise mit großer Wahrscheinlichkeit darauf hin, daß das lebendige Eiweiß das Cyanradikal in sich enthält und sich dadurch vom toten oder Nahrungseiweiß fundamental unterscheidet. Diese Argumente PFLÜGERs haben freilich heute aus einem doppelten Grunde an Bedeutung verloren. Einerseits nämlich ist es in neuerer Zeit HOFMEISTER gelungen, auch aus totem Eiweiß Harnstoff herzustellen, und anderseits wissen wir heute, daß die stickstoffhaltigen Stoffe der regressiven Eiweißmetamorphose, wie Harnstoff, Harnsäure, Hippursäure etc., soweit uns ihre Genese bekannt ist, nicht direkt aus dem Zerfall des lebendigen Eiweißmoleküls als solche hervorgehen, sondern vielmehr aus den bei diesem Zerfall entstehenden Stoffen, wie Kohlensäure, Milchsäure, Ammoniak etc., erst sekundär synthetisch aufgebaut werden[313]. Immerhin aber wird dadurch die PFLÜGERsche Cyanhypothese an sich nicht umgestoßen, und es existieren bisher keine Gründe, welche dieselbe direkt widerlegen könnten. Es verdienen daher auch noch immer die Schlußfolgerungen Beachtung, die PFLÜGER aus dieser Hypothese weiterhin zieht. PFLÜGER sagt: „Bei der Bildung von Zellsubstanz, d. h. von lebendigem Eiweiß aus Nahrungseiweiß, findet eine Veränderung desselben, wahrscheinlich mit gleichzeitiger bedeutender Wärmebindung, statt, indem die Stickstoffatome mit den Kohlenstoffatomen in cyanartige Beziehung treten.“ Daß eine bedeutende Wärmeaufnahme bei der Bildung des Cyans stattfindet, geht daraus hervor, daß das Cyan, wie die kalorimetrische Untersuchung desselben zeigt, ein Radikal mit großer innerer Energiemenge vorstellt. Durch Einfügung des Cyans in das lebendige Molekül wird also „ein Moment innerer starker Bewegung in die lebendige Materie eingeführt“.
Danach erklärt sich die große Zersetzbarkeit des lebendigen Eiweißes infolge der Sauerstoffaufnahme, denn da die Atome des Cyans in starken Schwingungen sind, wird das Kohlenstoffatom des Cyans bei gelegentlicher Annäherung zweier Sauerstoffatome aus der Wirkungssphäre des Stickstoffatoms heraus näher an die Wirkungssphäre der Sauerstoffatome kommen und mit diesen zu Kohlensäure vereinigt austreten. So liegen also nach PFLÜGER die Bedingungen für die Kohlensäurebildung, d. h. für den Zerfall der lebendigen Substanz, einerseits im Cyan und andrerseits in der intramolekularen Einfügung des Sauerstoffs in das lebendige Eiweißmolekül.
Von diesen Gesichtspunkten aus ergeben sich für PFLÜGER die wichtigsten Andeutungen hinsichtlich der Frage, wie das Leben auf der Erde entstanden sei. „Wenn man an den Anfang des organischen Lebens denkt, muß man nicht Kohlensäure und Ammoniak primär in das Auge fassen. Denn beide sind das Ende des Lebens, nicht der Anfang.“ „Der Anfang liegt vielmehr im Cyan.“
Das Problem von der Entstehung der lebendigen Substanz spitzt sich also auf die Frage zu: wie entsteht das Cyan. Hier führt uns aber die organische Chemie vor die höchst bedeutungsvolle Tatsache, daß das Cyan und seine Verbindungen, wie Cyankalium, Cyanammonium, Cyanwasserstoff, Cyansäure etc., nur entstehen in der Glühhitze, etwa wenn man die nötigen stickstoffhaltigen Verbindungen mit glühenden Kohlen zusammenbringt oder das Gemenge zur Weißglut erhitzt. „Es ist sonach nichts klarer als die Möglichkeit der Bildung von Cyanverbindungen, als die Erde noch ganz oder partiell in feurigem oder erhitztem Zustande war.“ Dazu kommt, daß die Chemie uns zeigt, wie die anderen wesentlichen Konstituenten des Eiweißes, wie etwa Kohlenwasserstoffe, Alkoholradikale etc., ebenfalls synthetisch in der Hitze entstehen können.
„Man sieht, wie ganz außerordentlich und merkwürdig uns alle Tatsachen der Chemie auf das Feuer hinweisen, als die Kraft, welche die Konstituenten des Eiweißes durch Synthese erzeugt hat. Das Leben entstammt also dem Feuer und ist in seinen Grundbedingungen angelegt zu einer Zeit, wo die Erde noch ein glühender Feuerball war.“
„Erwägt man nun die unermeßlich langen Zeiträume, in denen sich die Abkühlung der Erdoberfläche unendlich langsam vollzog, so hatten das Cyan und die Verbindungen, die Cyan- und Kohlenwasserstoffe enthielten, alle Zeit und Gelegenheit, ihrer großen Neigung zur Umsetzung und Bildung von Polymerien in ausgedehntester Weise zu folgen und unter Mitwirkung des Sauerstoffs und später des Wassers und der Salze in jenes selbstzersetzliche Eiweiß überzugehen, das lebendige Materie ist.“
PFLÜGER faßt daher seine Vorstellung in folgenden Sätzen zusammen:
„Demnach würde ich sagen, daß das erste Eiweiß, welches entstand, sogleich lebendige Materie war, begabt mit der Eigenschaft, in allen seinen Radikalen mit großer Kraft und Vorliebe besonders gleichartige Bestandteile anzuziehen, um sie dem Molekül chemisch einzufügen und so in infinitum zu wachsen. Nach dieser Vorstellung braucht also das lebendige Eiweiß gar kein konstantes Molekulargewicht zu haben, weil es eben ein in fortwährender, nie endender Bildung begriffenes und sich wieder zersetzendes ungeheures Molekül ist, das sich wahrscheinlich zu den gewöhnlichen chemischen Molekülen wie die Sonne gegen ein kleines Meteor verhält.“
„In der Pflanze fährt also das lebendige Eiweiß nur fort zu tun, was es immer seit seinem ersten Entstehen tat, d. h. sich fortwährend zu regenerieren oder zu wachsen, weshalb ich glaube, daß alles heute in der Welt vorhandene Eiweiß direkt von jenem ersten abstammt. Deshalb zweifle ich an der Generatio spontanea in der gegenwärtigen Zeit; auch die vergleichende Biologie deutet unverkennbar darauf hin, daß alles Lebendige aus nur einer einzigen Wurzel seinen Ursprung genommen hat.“
5. Die Hypothese von F. J. ALLEN.
In gewisser Beziehung Verwandtschaft mit den Vorstellungen PFLÜGERs haben die Betrachtungen, die F. J. ALLEN über Wesen und Herkunft des Lebens angestellt hat[314]. Auch ALLEN steht auf dem Boden der Urzeugungslehre, auch er geht von chemischen Ueberlegungen aus, und auch er legt den Schwerpunkt auf die Eigenschaften des Stickstoffs. Allein, er scheut sich vor Angaben über spezielle Verhältnisse und faßt seine Annahmen mit Recht etwas allgemeiner, wo im einzelnen verschiedenartige Möglichkeiten auf dem Boden seiner Anschauung gegeben sind.
ALLEN überblickt die charakteristischen Eigenschaften, welche die wesentlichen organischen Elemente N, C, H, O, S, Fe in ihren verschiedenartigen Verbindungen zeigen und kommt zu dem Schluß, daß der Stickstoff von allen anderen besonders dadurch unterschieden ist, daß seine Verbindungen sich durch mehr oder weniger große Zersetzlichkeit, d. h. chemische Aktivität auszeichnen. In dieser Eigenschaft des Stickstoffs sieht er seine besondere Befähigung zur Bildung labiler Atomkomplexe, wie sie die lebendige Substanz charakterisieren. Der Kern des Lebens liegt daher nach seiner Meinung in den Eigenschaften des Stickstoffs.
Weiterhin trägt ALLEN wie PFLÜGER der Tatsache Rechnung, daß der Sauerstoff für die Zersetzlichkeit der lebendigen Substanz eine fundamentale Bedeutung besitzt und daß mit der Zersetzung eine beträchtliche Energieentwicklung verknüpft ist. Er nimmt daher an, daß im Lebensvorgang der Sauerstoff dadurch eine große Rolle spielt, daß er fortwährend dem Stickstoff chemisch angefügt wird, um dann diesem durch die stärkere Affinität zum Wasserstoff und Kohlenstoff entrissen zu werden. Dabei wird Wasser und Kohlensäure gebildet, ein Prozeß, der natürlich mit beträchtlicher Energieproduktion verbunden ist. „Every vital action involves the passage of oxygen either to or from nitrogen.“
In bezug auf das aktive Molekül der lebendigen Substanz denkt sich ALLEN, daß es ein ungeheuer komplexes Molekül ist, in welchem verschiedenartige Atomgruppen durch Stickstoffatome miteinander verknüpft sind derartig, daß die Stickstoffatome zentrale Lagerung haben, ohne aber kettenartig miteinander verbunden zu sein. Stirbt die lebendige Substanz ab, so fallen die einzelnen Atomgruppen auseinander. Ihre Stickstoffatome sind nunmehr peripherisch gelegen und dadurch sind diese Atomgruppen stabiler geworden. Beim Aufbau der lebendigen Substanz dagegen werden stabile Atomkomplexe mit peripherisch gelegenen Stickstoffatomen dem großen aktiven Molekül der lebendigen Substanz angelagert, und ihr Stickstoff bekommt dadurch als zusammenkoppelndes Bindeglied eine zentrale Lagerung. Welche Atomgruppen im Innern des großen Moleküls der Stickstoff verbindet, läßt ALLEN offen. Er hält es nicht für zweckmäßig, irgendwelche speziellen Bindungen des Stickstoffs, wie etwa das Cyanradikal, besonders hervorzuheben, denn es sind hier die verschiedenartigsten Möglichkeiten gegeben. Er sieht daher auch keine Veranlassung, die Keime des Lebens bis in die Glutzeit der Erde zu verfolgen, wie es PFLÜGER auf Grund seiner Cyanhypothese tut. Er stellt sich vielmehr wie HAECKEL vor, daß die Anfänge des Lebens erst begannen, als das Wasser sich schon auf der Erdoberfläche niedergeschlagen hatte. In dieser Zeit hatten sich nach dem Bilde, das ALLEN provisorisch entwirft, die schwereren, stabileren, unlöslichen Verbindungen am Boden abgelagert, die labileren, zersetzlicheren waren teils in Gasform in der Luft, teils in gelöstem Zustande im Wasser enthalten. Bei den mächtigen elektrischen Entladungen, bei denen fortwährend Blitze durch die feuchte, warme Atmosphäre zuckten, entstanden wie in geringem Umfange heute noch Ammoniak und die Oxyde des Stickstoffs, die durch den Regen niedergerissen und gelöst wurden. Im Wasser war Kohlensäure in reichlicher Menge vorhanden, und die Chloride, Sulfate, Phosphate der Alkalien und Metalle waren im Wasser gelöst. Es war daher Gelegenheit gegeben für den Stickstoff, mit den verschiedensten anderen Stoffen in Wechselbeziehungen zu treten, und so nimmt ALLEN an, daß gleich die erste lebendige Substanz, die sich aus diesen Reaktionen ergab, im wesentlichen Leben von den Eigenschaften zeigte, wie wir es heute noch auf der Erdoberfläche finden. Auf die Einzelheiten der Bildung lebendiger Substanz, deren Ausmalung vorläufig noch allzu spekulativen Charakter haben müßte, geht ALLEN nicht näher ein. Er stellt nur die Vermutung auf, daß bei der Uebertragung des Sauerstoffs vom oder zum Stickstoff etwa das Eisen in seinen Verbindungen eine Rolle gespielt haben möchte, wie es ja noch heute im Hämoglobin als Sauerstoffüberträger von großer Bedeutung ist.
B. Kritisches.
1. Ewigkeit oder Entstehung der lebendigen Substanz.
Unter den Ideen über die Abstammung des Lebens auf der Erde, die in den eben aufgeführten Theorien enthalten sind, stehen zwei Vorstellungen in scharfem Gegensatz zueinander. Dieser Gegensatz findet seinen Ausdruck in der schon von HELMHOLTZ (l. c.) aufgestellten Alternative: „Organisches Leben hat entweder zu irgendeiner Zeit angefangen zu bestehen, oder es besteht von Ewigkeit.“ Die erstere Vorstellung liegt der Urzeugungslehre zugrunde, die letztere der Kosmozoentheorie und in gewissem Sinne auch der Theorie PREYERs. Beide sich gegenüberstehende Vorstellungen schließen einander selbstverständlich aus. Nimmt man die eine an, so verwirft man damit zugleich die andere, und umgekehrt. Es fragt sich aber: welcher von beiden soll man sich anschließen?
Prüfen wir zunächst die Kosmozoentheorie. Sie sagt, daß das Leben nicht entstanden sei, sondern von Ewigkeit an im Weltall bestanden habe und nur von einem Weltkörper auf den anderen übertragen worden sei. Eine direkte Widerlegung dieser Lehre, ein Unmöglichkeitsnachweis von unbedingt bindender Kraft dürfte sich bei dem jetzigen Stande unserer Kenntnisse wohl kaum finden lassen. Solange unsere Erfahrungen nicht ausreichen, um den Transport lebensfähiger protoplasmatischer Keime von einem Weltkörper auf einen anderen mit Sicherheit als unmöglich zu kennzeichnen, wird es überhaupt sehr schwer sein, die Kosmozoenlehre direkt zu widerlegen. Aber wenn auch eine direkte Widerlegung zurzeit nicht möglich ist, so läßt sich doch der Gedanke, daß die lebendige Substanz von Ewigkeit her bestanden habe und nie aus anorganischer Substanz entstanden sei, im höchsten Grade unwahrscheinlich machen.
Wie unsere vergleichende Betrachtung der Organismen und anorganischen Körper[315] ergeben hat, bestehen die Organismen aus keinen anderen chemischen Elementarstoffen als denen, die wir auch in der anorganischen Körperwelt finden, und unterscheiden sich von den letzteren nur durch die chemischen Verbindungen, aus denen sie aufgebaut sind. Die wesentlichen Verbindungen der lebendigen Substanz, die Eiweißkörper, stehen also keineswegs in einem prinzipiellen Gegensatz zu den Körpern der anorganischen Natur und unterscheiden sich von diesen prinzipiell nicht mehr als die verschiedenen anorganischen Verbindungen untereinander. Eine allgemeine Betrachtung, die man über die Abstammung der lebendigen Substanz, vor allem des Eiweißes, anstellt, muß daher mit derselben Berechtigung in ihren prinzipiellen Gesichtspunkten auch auf die anorganischen Verbindungen, wie etwa die Mineralien, den Feldspat, den Quarz etc., angewendet werden können. Hier aber zeigt sich deutlicher als bei der lebendigen Substanz, zu welchen unhaltbaren Konsequenzen die der Kosmozoenlehre zugrunde liegende Idee führt; denn wenn wir annehmen, daß die komplizierten Verbindungen der lebendigen Substanz, vor allem die Eiweißkörper, nie entstanden sind, sondern von Ewigkeit an irgendwo im Weltraume existiert haben und von dort auf unsere Erde gelangt sind, so müssen wir mit derselben Logik und derselben Wahrscheinlichkeit annehmen, daß auch die anorganischen Verbindungen, der Quarz, der Feldspat als solcher, immer im Weltraum irgendwo vorhanden gewesen und nur durch den Weltraum von einem anderen Weltkörper her auf unsere Erde gekommen seien. Und wenn man diese Betrachtung für alle chemischen Verbindungen durchführt, die unsere Erde zusammensetzen, und für die sie logisch unerbittlich denselben Grad von Wahrscheinlichkeit beansprucht wie für die Verbindungen der lebendigen Substanz, so würde man zu der absurden Konsequenz gelangen, daß schließlich alle Verbindungen der ganzen Erde als solche schon fertig von außen her in unser Planetensystem eingewandert sein müssen. Diese Konsequenz anzunehmen würde sich wohl kaum ein Naturforscher entschließen, denn jeder Geologe kennt Beispiele genug von Mineralien, die nachweislich als solche erst auf der Erde auf chemischem Wege entstanden sind, und jeder Chemiker läßt täglich chemische Verbindungen aus einfacheren Stoffen im Laboratorium entstehen; ja, kein denkender Chemiker zweifelt heutzutage mehr daran, daß sogar die sogenannten chemischen Elemente ursprünglich nicht als solche existiert haben, sondern daß die Elemente mit höherem Atomgewicht erst später aus Elementen mit geringerem Atomgewicht entstanden sind. Zieht man aber die letzte Konsequenz aus den angeführten Ideen, dann leugnet man damit zugleich auch jede Entwicklung nicht nur der lebendigen Substanz, sondern des ganzen Erdkörpers; denn wenn alle Verbindungen von Ewigkeit her als solche existiert haben und niemals aus einfacheren Stoffen entstanden sind, dann fällt eben alle Entwicklung fort. Das ist eine unabweisbare Konsequenz, wenn man nur daran festhält, daß dieselbe Betrachtung, die für die Abstammung der Verbindungen in der lebendigen Substanz angenommen wird, mit der gleichen Berechtigung und genau derselben Wahrscheinlichkeit auch auf die Verbindungen der leblosen Substanz angewendet werden kann. Man hat aber kein Recht, für den Feldspat ein anderes Prinzip der Abstammung anzunehmen als für das Eiweiß. Beide sind Verbindungen von chemischen Elementen.
In einem ganz anderen Sinne als die Kosmozoenlehre, die übrigens nur wenig Anklang gefunden hat, erklärt PREYER in seiner Theorie das Leben für anfangslos und ewig. PREYER sagt: Die lebendige Substanz, die jetzt die Erdoberfläche bewohnt, stammt in lückenloser Deszendenz von den Substanzen ab, die einst als feurig-flüssige Massen den Erdball zusammensetzten. Die letzteren nicht als lebendig zu bezeichnen, wäre willkürlich, da sich keine scharfe Grenze feststellen läßt. Da diese Substanzen nun aber wieder von der Sonnenmasse abstammen, und letztere wieder nur einen Teil der Materie des Weltganzen bildet, die in ewiger Bewegung begriffen ist, so wäre danach das Leben, das selbst nur ein komplizierter Bewegungsvorgang ist, ebenfalls so alt wie die Materie.
Es liegt auf der Hand, daß die Differenz zwischen PREYERs Theorie und der Lehre von der Urzeugung im wesentlichen nur in der verschiedenen Fassung des Lebensbegriffs liegt. Die Urzeugungslehre bezeichnet dem Sprachgebrauch folgend als lebendig nur die lebendige Substanz, wie wir sie jetzt im Gegensatz zu der leblosen Substanz kennen, während PREYER den Lebensbegriff viel weiter faßt und auch glühende Gemenge als lebendig bezeichnet, die mit der jetzigen lebendigen Substanz nicht mehr die geringste Aehnlichkeit haben, außer darin, daß sie auch in energischer Bewegung begriffen sind. Fassen wir den Lebensbegriff in dieser weiten Ausdehnung, dann läßt sich in der Tat nichts gegen die übrigen Konsequenzen der PREYERschen Theorie einwenden. Es fragt sich aber, ob es zweckmäßig ist, und ob wir überhaupt das Recht haben, den Lebensbegriff so weit auszudehnen.
Der Begriff der lebendigen Substanz, wie wir ihn heute wissenschaftlich fixiert haben, ist hervorgegangen aus einer genauen Vergleichung der jetzt lebenden Organismen mit den jetzt existierenden anorganischen Körpern. Wie wir gesehen haben[316], gibt es da nur einen einzigen wirklich durchgreifenden Unterschied, der besteht in dem Stoffwechsel von Eiweißverbindungen. Kein anorganischer Körper besitzt Eiweiß. Dagegen fehlt das Eiweiß in keinem einzigen Organismus, und was das Leben des Organismus ausmacht, worin sich dieser vom toten Organismus unterscheidet, das ist der Stoffwechsel des Eiweißes. Das ist, wenn auch kein prinzipieller, elementarer, so doch ein durchgreifender Unterschied zwischen lebendigen Organismen und toten, anorganischen Körpern, der uns das einzige Mittel an die Hand gibt, die lebendige Substanz scharf zu charakterisieren. Lassen wir diesen Unterschied fallen, indem wir auch Körper, die kein Eiweiß enthalten können, wie die glühenden Massen des einst feurigen Erdballs, als lebendige Substanz bezeichnen, so geben wir den ganzen Vorteil, den uns eine scharfe Definition gewährt, wieder auf, und der Begriff der lebendigen Substanz zerfließt uns zwischen den Fingern, wir können ihn nicht mehr fassen.
Allein hier kann man vom Standpunkt der PREYERschen Theorie die Frage aufwerfen: Wenn die lebendige Substanz von heute in lückenloser Deszendenz von feurig-flüssigen Gemengen abstammt, wo ist dann die Grenze, der Punkt, von dem an man die Substanz als lebendig bezeichnet? Diese Frage macht eine Voraussetzung, die sich in keiner Weise stützen läßt, das ist die Voraussetzung, daß überhaupt ein ganz allmählicher und lückenloser Uebergang zwischen den feurig-flüssigen Gemischen und den Eiweißkörpern vorhanden war. Wir haben zwar bisher immer den größten Wert darauf gelegt, zu zeigen, daß kein prinzipieller Unterschied zwischen lebendigen Körpern und leblosen Substanzen besteht; daß aber ein lückenloser Uebergang zwischen feurig-flüssigen Substanzen und Organismen bestände, läßt sich durchaus nicht beweisen. Wissen wir doch, daß bei zwei chemischen Verbindungen, die aufeinander einwirken, die resultierenden Substanzen durch keinerlei Uebergangsstufen mit den ursprünglichen Stoffen verbunden zu sein brauchen, wie verschieden sie auch von ihnen sein mögen. Ueber die Verhältnisse aber, die etwa zur Zeit, als sich das Wasser in tropfbar-flüssiger Form niederschlug, auf der Erdoberfläche geherrscht haben mögen, können wir uns auch nicht eine annähernde Vorstellung machen. Danach hätte die Vorstellung, daß das lebendige Eiweiß aus der Einwirkung chemisch ganz von ihm verschiedener Körper ohne Uebergang entstanden sei zu einer Zeit, als die Bedingungen dazu gegeben waren, mindestens ebensoviel Wahrscheinlichkeit wie die Idee einer allmählichen und durch lückenlose Uebergänge verbundenen Deszendenz.
Ferner macht PREYER die stillschweigende Voraussetzung, daß die glühenden Massen, auf die er den Begriff des Lebens ausdehnt, einen Stoffwechsel gehabt haben. Auch diese Annahme läßt sich durch keinerlei Betrachtung stützen. Zwar wird man einerseits nicht daran zweifeln dürfen, daß diese glühenden Massen eine äußerst energische innere Bewegung besessen haben, und anderseits ist das Leben ebenfalls nichts anderes als ein Bewegungskomplex, mit dem jeder andere molekulare Bewegungsvorgang im Prinzip verwandt ist. Aber dennoch ist die Lebensbewegung, der Stoffwechsel ein den lebendigen Organismus überaus scharf charakterisierender Bewegungskomplex, der darin besteht, daß die lebendige Substanz fortwährend von selbst zerfällt, die Zerfallsprodukte nach außen abgibt und dafür bestimmte Stoffe von außen wieder aufnimmt, die ihr das Material geben, sich wieder zu regenerieren und durch Neubildung gleichartiger Atomgruppen zu wachsen. Das ist ein ganz allgemeines Charakteristikum aller lebendigen Substanz. Daß aber dieser ganz eigentümliche Bewegungskomplex bereits an den glühenden Gemischen des Erdkörpers bestanden und seitdem bis heute, bis auf die Tage unserer jetzigen lebendigen Substanz hin, keine Unterbrechung erlitten habe, ist in hohem Grade zweifelhaft. Die glühenden Gemische des Erdinnern, die wir noch heutzutage an Vulkanen zu beobachten Gelegenheit haben, wie die Laven, die beim Austritt aus einem Spalt des Kraters noch so dünnflüssig sind, daß sie beim Herabstürzen über die Felsenabhänge dem Beobachter den wunderbar fesselnden Anblick eines glühenden Wasserfalls gewähren, selbst diese äußerst flüssigen Gemische, so beweglich sie auch sein mögen, zeigen doch keinen Stoffwechsel im physiologischen Sinne, und wir haben daher nicht das Recht, sie als lebendig zu bezeichnen. So geistreich die PREYERsche Theorie auch ist, wir können uns deshalb bei kühler Ueberlegung doch nicht entschließen, die glühenden Massen, die einst den ganzen Erdkörper bildeten, als lebendig im wirklichen Sinne zu betrachten. Dann aber bleibt als einziger Unterschied der PREYERschen Lehre von der Urzeugungstheorie nur die ganz unwesentliche Frage übrig, ob die lebendige Substanz allmählich und durch unmerkliche Uebergänge aus leblosen Substanzen hervorgegangen sei, oder ob sie mehr unvermittelt, wie die Produkte bei einer chemischen Einwirkung zweier verschiedener Körper im Reagenzglase, sich gebildet und ihre charakteristischen Eigenschaften angenommen habe. Auf keinen Fall aber werden wir dem Schlusse entgehen, daß die lebendige Substanz einst aus Substanzen hervorgegangen ist, die wir als leblose zu bezeichnen gewohnt sind.
2. Die Deszendenz der lebendigen Substanz.
Im Anschluß an ähnliche Vorstellungen, wie sie von PFLÜGER und ALLEN entwickelt worden sind, können wir uns allenfalls in groben Umrissen eine provisorische Hypothese von der Entstehung des Lebens auf der Erde machen, wie sie den heutigen Erfahrungen und Anschauungen der Naturwissenschaft etwa am meisten entsprechen würde. Die Wurzeln des Lebens reichen vielleicht hinab bis in jene Zeit, wo die Erdoberfläche noch glühend war. Die damals vorhandenen Stickstoffverbindungen lieferten jedenfalls das wesentliche Rohmaterial, aus dem die lebendige Substanz ihren Ursprung nahm. Sie mußten bei ihrer leichten Zersetzbarkeit in Wechselwirkung mit den verschiedensten Kohlenstoffverbindungen treten, etwa mit Karbiden etc., die ebenfalls der Glühhitze ihre Entstehung verdanken. Als das Wasser sich dann in tropfbar-flüssiger Form auf der Erdoberfläche niederschlug, gingen diese dem Feuer entsprossenen Verbindungen chemische Beziehungen ein mit dem Wasser und den darin gelösten Stoffen, und so entstanden die Eiweißverbindungen, jene höchst labilen Körper, die wie viele andere den Stickstoff enthaltende Atomkomplexe sich durch ihre Neigung zur Zersetzung und zur Polymerisierung auszeichnen und die wesentlichen Bestandteile der lebendigen Substanz bilden. Diese erste lebendige Substanz, die durch Urzeugung aus leblosen Substanzen sich bildete, war jedenfalls noch sehr einfach und zeigte keinerlei Differenzierungen. Es ist im höchsten Grade wahrscheinlich, daß sie noch nicht den morphologischen Wert von Zellen hatte, d. h. daß ihre Masse noch nicht in zwei räumlich gesonderte Stoffgemische, in den Kern und das Protoplasma, geschieden, sondern vielmehr ein gleichartiges Gemisch war, wie es HAECKEL für seine Moneren annimmt.
Das würde etwa die Vorstellung sein, die man sich heute mit einem gewissen Anstrich von Wahrscheinlichkeit über die Entstehung der lebendigen Substanz machen kann. Immerhin ist es nicht ausgeschlossen, daß sie später einmal in ihren Einzelheiten ganz wesentlich modifiziert werden wird. Der Schauplatz, auf dem die lebendige Substanz zuerst auftrat, und die Verhältnisse, die auf demselben herrschten, sind uns zur Zeit nur in so unbestimmten Umrissen bekannt, daß es wenig Wert hat, über die Einzelheiten noch weiter zu spekulieren. Mit dem Auftreten der lebendigen Substanz auf der Bühne des Erdballs aber gewinnen wir wieder etwas festeren Boden, denn hier ist der Punkt, wo die von LAMARCK und DARWIN begründete und besonders von HAECKEL, WEISMANN, DE VRIES und ihren Schülern ausgebaute Deszendenzlehre einsetzt und uns die weiteren Schicksale der lebendigen Substanz bis in unsere Tage erläutert.
Den ganzen ungeheuren Ideenkomplex, der zur Begründung der Deszendenzlehre geführt hat, hier zu besprechen, würde außerhalb des Rahmens dieser Blätter liegen. Es genügt uns, die Hauptmomente anzudeuten, welche die Grundlage abgeben für die Deszendenzlehre, an deren Richtigkeit übrigens heute kein denkender Naturforscher mehr zweifelt.
Bekanntlich lehrt die Deszendenztheorie, daß die ganze Formenfülle der Organismen, die heute auf der Erdoberfläche leben und je gelebt haben, in ununterbrochener Deszendenz abstammt von jener ersten und einfachsten lebendigen Substanz, die aus leblosen Stoffen entstanden ist, daß also alle Organismen in wirklichen verwandtschaftlichen Beziehungen zueinander stehen. Für die historische Zeit bedarf die Kontinuität der Organismenreihen keiner besonderen Begründung, denn die einfache Erfahrung zeigt, daß jeder Organismus immer nur wieder von einem anderen, ihm ähnlichen abstammt, daß die Kontinuität der Deszendenz niemals eine Unterbrechung erfährt. Dagegen für die unendlich langen Zeiträume, die, wie die Geologie gezeigt hat, seit der Entstehung der ersten Organismen bis zu historischer Zeit verstrichen sind, fehlt natürlich die direkte Beobachtung. Allein, hier hat uns die Natur gewisse Urkunden aufbewahrt, in denen wir die Geschichte der Entwicklung des ganzen Organismenstammes, wenn auch mehr oder weniger lückenhaft, aufgezeichnet finden.
Die erste Urkunde entziffert uns die Paläontologie oder Versteinerungskunde. Es sind die Zeugnisse, welche die Natur über die Existenz und Beschaffenheit der früheren Organismen in den Schichten der Erdrinde selbst niedergelegt hat: die Versteinerungen oder Petrefakten. Mit der Erforschung der Versteinerungen, die sich in den verschiedenen Schichten der Erdrinde finden, rekonstruiert die Paläontologie bis zu einem gewissen Grade die Organismenwelt, welche zu jenen Zeiten, als diese Schichten sich bildeten, die Erdoberfläche bevölkerte. So lernen wir die Vorfahren unserer heutigen Organismen kennen und sehen, wie sie in den jüngsten Schichten den jetzt lebenden Tieren und Pflanzen noch sehr ähnlich sind, wie sie ihnen aber um so unähnlicher werden, je tiefer wir bis zu den ältesten Schichten hinabsteigen, und wie ganze große Organismengruppen, die wir heute für weit voneinander getrennt betrachten, in älteren Schichten gemeinsame Vorfahren haben, die gewisse charakteristische Eigenschaften mehrerer Organismengruppen noch in sich vereinigen. In den allerältesten Schichten finden wir nur niedere Tiere und Pflanzen — noch keine Wirbeltiere und Blütenpflanzen. Für jeden, der nicht einem blinden, supranaturalistischen Schöpfungsglauben huldigt und es nicht vorzieht, wie der biblische Schöpfungsbericht jede Organismenform für sich aus der Hand eines persönlichen Schöpfers hervorgegangen zu denken, für den gibt es nur eine einzige natürliche Erklärung aller paläontologischen Tatsachen, das ist die, daß die ganze Organismenwelt, welche heute lebt und überhaupt je gelebt hat, einen einzigen großen Stammbaum bildet, dessen Keim die erste lebendige Substanz war, die auf der Erde entstand. Dieser Keim entwickelte sich zu einem gewaltigen Baum mit unzähligen Aesten und Zweigen und Blättern, deren letzte Sprossen wir in der heutigen Organismenwelt vor uns haben, deren ältere Aeste im Schoß der Mutter Erde begraben liegen. Leider ist die paläontologische Urkunde sehr lückenhaft, denn einerseits ist nur ein sehr kleiner Teil der Erdschichten unserer Untersuchung zugänglich — die große Masse der Erdrinde ist vom Meere bedeckt —, und anderseits ist die Erhaltung der Organismen teilweise eine sehr unvollkommene, weil sie überhaupt nur unter ganz bestimmten Bedingungen eingebettet werden konnten, ohne vom Wellenschlage oder von der Fäulnis etc. zerstört zu werden; ja Organismen ohne schützende Skelettteile sind äußerst selten überliefert worden, weil ihr weicher Körper nach ihrem Tode sofort zerfallen mußte. So kommt es auch, daß uns gerade bei der Erforschung der ältesten, einfachsten Organismen, die noch keine schützenden Skelettteile besaßen, die paläontologische Urkunde im Stich läßt.
Die vergleichende Anatomie beschäftigt sich mit der zweiten Urkunde, die in den Homologien der einzelnen Organe der jetzt lebenden Organismen gegeben ist. Wenn die vergleichende Anatomie durch Zergliederung der Organismen bis in ihre feinsten Teile und durch Vergleichung der einzelnen Organsysteme und Organe verschiedener Organismengruppen untereinander die Tatsache feststellt, daß gewisse Organismengruppen mit anderen in wesentlichen Organsystemen bis zu einem gewissen Grade übereinstimmen, so kann diese Tatsache auf natürliche Weise wieder nicht anders gedeutet werden als durch eine natürliche Verwandtschaft dieser Organismen, die im allgemeinen um so näher ist, je mehr Homologien sich finden, um so entfernter, je mehr Unterschiede daneben vorhanden sind; denn die Homologien können nur dadurch bedingt sein, daß die betreffenden Organismen in grauer Vorzeit einmal gemeinsame Vorfahren gehabt haben, die diese Merkmale besaßen. Freilich ist auch die Urkunde der vergleichenden Anatomie nur sehr unvollständig, denn die heutigen Organismen sind ja nur die übrig gebliebenen Spitzen der verschiedenen Zweige des großen Organismenstammbaumes, zwischen denen die anderen Zweige und Aeste abgestorben sind. Aber hier ergänzt gerade die paläontologische Urkunde die Tatsachen der vergleichenden Anatomie bis zu einem bestimmten Grade in erfreulichster Weise, indem sie auch die ausgestorbenen Aeste der Vergleichung mit den noch lebenden zugänglich macht. Ein Beispiel erläutert das am besten. Aus vergleichend-anatomischen Gründen war man zu der Ueberzeugung gekommen, daß die Vögel mit den Reptilien in nächster verwandtschaftlicher Beziehung ständen; allein man kannte Formen, die den gemeinsamen Vorfahren entsprächen oder nahe ständen, noch nicht. Da wurde in den Steinbrüchen des Solnhofener lithographischen Schiefers jenes versteinerte Tier von etwa Taubengröße entdeckt, der bekannte Archaeopteryx macrurus, das sowohl Vogel- als Reptiliencharaktere nebeneinander besaß, denn es hatte ein Eidechsengebiß mit Zähnen und eine Eidechsenwirbelsäule mit einem langen Eidechsenschwanz, war aber auf seinem ganzen Körper mit Vogelfedern bedeckt, die auf dem Gestein in feinster Weise abgedrückt sind (Fig. 151). Durch diesen und ähnliche paläontologische Funde wurde die aus der vergleichenden Anatomie gefolgerte Verwandtschaft der Vögel und Reptilien auf das glänzendste bestätigt, und ähnliche Beispiele lassen sich heute in unzähliger Menge anführen.
Die Embryologie oder individuelle Keimesentwicklung (Ontogenie) lehrt uns schließlich die dritte wichtige Urkunde über die Deszendenz entziffern. Bekanntlich durchläuft der Keim der Pflanzen und Tiere von seinem einfachsten Zustande, der Eizelle, an, eine lange Reihe von Entwicklungsstadien, ehe er dem Mutterorganismus, von dem er abstammt, ähnlich wird.
Da wir wissen, daß die Vorfahren stets ihre charakteristischen Eigenschaften auf ihre Nachkommen vererben, so gewinnen diese Entwicklungsstadien, die der Organismus allmählich durchläuft, eine außerordentlich große Bedeutung für die Erkenntnis der Vorfahrenreihe; denn da sie im großen und ganzen von den Vorfahren her ererbte Formenverhältnisse vorstellen, so werden sie, wenn auch nur in groben Umrissen, die Entwicklungsformen andeuten, die in der Vorfahrenreihe einst nacheinander aufgetreten sind; mit anderen Worten, die in der Keimesentwicklung oder Ontogenie eines Individuums auftretenden Formen rekapitulieren im großen und ganzen die Formenreihe der Vorfahren des betreffenden Organismus. Dieses von HAECKEL begründete „biogenetische Grundgesetz“, das wir bereits an anderer Stelle[317] kennen lernten, setzt uns also in den Stand, durch kritische Untersuchung aus der ontogenetischen Entwicklung eines Organismus seine phylogenetische Deszendenz bis zu einem gewissen Grade zu rekonstruieren.
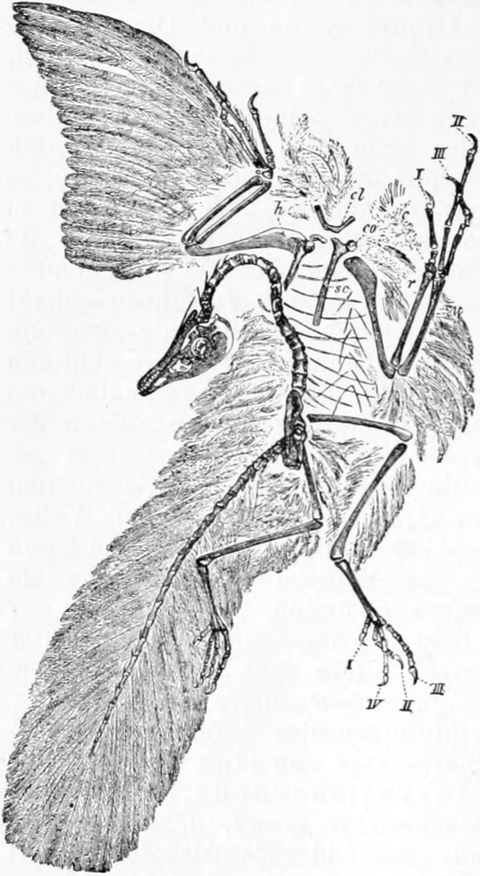
Fig. 151.
Archaeopteryx macrurus
, s.
lithographicus
.
cl
Clavicula,
co
Coracoid,
h
Humerus,
r
Radius,
u
Ulna,
c
Carpus,
sc
Scapula,
I
–
IV
Zehen. Nach Z
ITTEL
.
Aus allen diesen Tatsachen der Paläontologie, der vergleichenden Anatomie und der Embryologie, wegen deren ausführlicherer Würdigung auf die einschlägigen und grundlegenden Werke von DARWIN, GEGENBAUR, HAECKEL und ihren Schülern selbst verwiesen werden muß, ergibt sich nicht nur mit Notwendigkeit der Schluß, daß unsere jetzigen Organismen in lückenloser Deszendenz von der ersten, aus leblosen Stoffen entstandenen lebendigen Substanz abstammen, sondern auch zugleich der Weg, den die Entwicklung der lebendigen Substanz auf Erden genommen hat. Es ist der phylogenetischen Forschung unserer modernen Morphologie im wesentlichen gelungen, diesen Weg in großen Zügen festzustellen und so den Stammbaum der Organismen wenigstens in seinen groben Umrissen zu rekonstruieren. Wie sehr auch anfangs die provisorischen Stammbäume, die HAECKEL im Anschluß an die damals bekannten Tatsachen zuerst vor mehr als 40 Jahren aufstellte, Anfeindungen erfuhren, so wenig dürfte es jetzt noch vorurteilsfreie Morphologen geben, die nicht in den wesentlichen Punkten HAECKELs Idee der Stammbäume angenommen hätten. In der Tat herrscht jetzt über das phylogenetische Verhältnis der größeren Organismengruppen zueinander im wesentlichen Uebereinstimmung, wenn auch über die kleineren Gruppen und die ganz speziellen Verhältnisse noch manche weitgehende Differenz besteht, die erst allmählich durch immer neue Erfahrungen beseitigt werden wird. Nach diesen Vorstellungen hat die moderne Morphologie auf Grund des jetzigen Standes ihrer Forschungen etwa folgendes Bild von dem Stammbaum der Organismen entworfen:
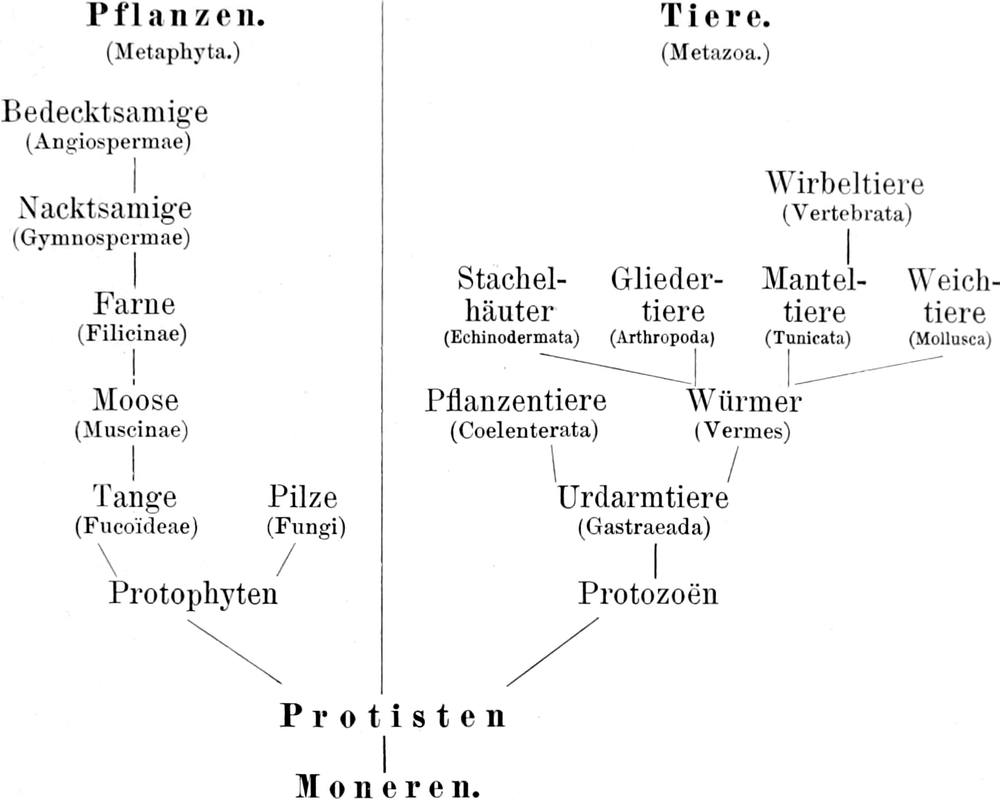
Schema des Stammbaums der Organismen
.
Aus den ersten lebendigen Massen, die HAECKEL als Moneren bezeichnet, entwickelten sich durch Differenzierung der homogenen Substanz in Kern und Protoplasma die ersten einzelligen Organismen, die Protisten. Die Protisten bilden diejenige Organismengruppe, aus der sich nach der einen Seite die Pflanzen, nach der anderen die Tiere entwickelt haben, und welche die niedrigsten noch jetzt lebenden Organismen umfaßt. Schon unter den Protisten aber fand eine Differenzierung der Art des Stoffwechsels statt, und die Protisten schieden sich in Protophyten, d. h. Protisten mit pflanzlichem Stoffwechsel und Protozoen, d. h. Protisten mit tierischem Stoffwechsel, indem die ersteren noch immer fortfuhren, aus anorganischen Stoffen ihre lebendige Substanz aufzubauen, während die letzteren den Stoffwechsel vereinfachten, indem sie gleich die von den ersteren gebildete organische Substanz selbst zum Aufbau ihres Körpers benutzten. Von den Protophyten stammen alle Pflanzen (Metaphyten), von den Protozoen alle Tiere (Metazoen) ab, und zwar in folgender Weise. Aus dem Protophytenstamm gingen zwei Aeste hervor, die Tange (Fucoideae) und Pilze (Fungi). Von diesen entwickelte sich der Ast der Tange weiter, und aus ihm entstanden in gerader Deszendenz die Moose (Muscinae), aus diesen die Farne (Filicinae), aus diesen die nacktsamigen (Gymnospermen), und aus den letzteren schließlich die bedecktsamigen (Angiospermen) Pflanzen, welche die höchste Differenzierung des ganzen Pflanzenreichs zeigen. Aus den Protozoen anderseits entstanden die Urdarmtiere (Gastraeaden), sehr einfache Tiere, nur aus zwei verschiedenen Zellenschichten (Entoderm und Ektoderm) bestehend, von denen wahrscheinlich jetzt keine Vertreter mehr leben, deren Vorhandensein in der Stammreihe aber aus dem weit verbreiteten Auftreten des Gastrulastadiums in der Entwicklung der meisten Tiere mit Notwendigkeit geschlossen werden muß. Aus den Urdarmtieren entwickelten sich einerseits die sogenannten Pflanzentiere (Cölenteraten) und anderseits die Würmer (Vermes). Letztere gaben den vier Gruppen der Stachelhäuter (Echinodermen), Gliedertiere (Arthropoden), Manteltiere (Tunicaten) und Weichtiere (Mollusken) den Ursprung, von denen die Manteltiere schließlich zu den Ahnen der Wirbeltiere wurden, der am weitesten differenzierten Vertreter des ganzen Tierreichs. Unsere heute lebenden Organismen bilden nur die letzten Spitzen aller dieser großen Zweige des gewaltigen Organismenstammbaumes.
Ein Ueberblick über die Stammesentwicklung der Organismen von ihrem ersten Entstehen bis in unsere Zeit zeigt uns, wie die lebendige Substanz im Laufe der Erdentwicklung eine ungemein weitgehende Wandlung ihrer Formen erfahren hat, wie die heutigen Organismen in Hinsicht auf ihre Form und Organisation sich weit nach den verschiedensten Richtungen hin differenziert haben. Eine natürliche Erklärung dieser Tatsache hat uns, wie wir bereits sahen, DARWINs Selektionstheorie gegeben.
Werfen wir schließlich noch einen kurzen Blick auf das Wesen der Veränderungen, welche die lebendige Substanz von ihrer Entstehung an bis jetzt durchgemacht hat, so tritt uns die Tatsache entgegen, daß sie sich von einfachen Formen an zu immer komplizierteren Gestalten und Organisationen entwickelt hat, so daß wir unter den heute lebenden Organismen die am höchsten komplizierten finden, wie etwa die Blütenpflanzen und die Wirbeltiere, in denen sich besondere Teile in weitestgehender Weise selbst für die Ausübung der speziellsten Verrichtungen differenziert haben. Man hat im Hinblick auf diese Tatsache häufig gesagt, daß sich in der Entwicklungsreihe der Organismen von den ersten Anfängen an bis jetzt ein dauernder Fortschritt, eine fortschreitende Vervollkommnung erblicken läßt. Diese Auffassung verfällt in den Fehler, den zu vermeiden das ganze Streben der DARWINschen Theorie war, nämlich in den Fehler der Teleologie. Der Begriff des Fortschritts, der Vervollkommnung involviert ein Ziel, nach dem hin der Fortschritt, die Vervollkommnung gerichtet ist. Ohne dieses Moment ist der Begriff wesenlos. In Wirklichkeit existiert aber für die Entwicklung der Organismen ebensowenig ein vorbestimmtes Ziel, nach dem sie strebt, wie für irgendeine chemische Reaktion. Sie kann nur erfolgen und muß in ganz bestimmter Weise erfolgen, wenn die sämtlichen Bedingungen da sind. Ihre Veränderung ist daher bedingt von der Veränderung ihrer Umgebung. Wenn wir also den Begriff des Fortschritts, der Vervollkommnung etc. anwenden, so kann das nur geschehen von einem anthropozentrischen Standpunkt aus, indem wir selbst ein Ziel in die Entwicklung hineintragen. Mag man das tun, aus welchen Rücksichten man will, auf jeden Fall muß man sich dabei bewußt bleiben, daß das Ziel dann ein künstlich gesetztes ist, nicht ein Ziel, das in der Natur selbst läge, denn die Annahme, daß der Mensch vollkommener sei als eine Amöbe, bleibt immer eine willkürliche, für welche die Wirklichkeit keine Berechtigung bietet, und wenn wir die Entwicklung eine Vervollkommnung nennen, so ist das nichts weiter als eine Konvention. Die Welt selbst hat kein Ziel, nach dem sie strebt; hier existiert nur ewige Entwicklung, d. h. Veränderung ohne Ende.
** *
Ziehen wir nunmehr das Fazit aus unseren Erörterungen. Klar und deutlich zeigt sich uns die Tatsache, daß das Leben von seinem ersten Beginn an durchaus bedingt war durch die Verhältnisse der Erdoberfläche. Das Leben ist eine Funktion der Erdentwicklung in mathematischem Sinne. Lebendige Substanz konnte nicht bestehen, solange die Erde ein feurig-flüssiger Ball ohne feste und kühle Rinde war; sie mußte aber entstehen, mit derselben unabwendbaren Notwendigkeit wie eine chemische Verbindung, als die nötigen Bedingungen gegeben waren, und sie mußte ihre Form, ihre Zusammensetzung etc. ändern in demselben Maße, wie sich die äußeren Lebensbedingungen im Laufe der Erdentwicklung änderten. Die lebendige Substanz ist lediglich ein Teil der Erdmasse. Die Synthese von Teilen dieser Erdmasse zu lebendiger Substanz war ebenso das notwendige Produkt der Erdentwicklung wie etwa die Entstehung des Wassers: eine unausbleibliche Folge der fortschreitenden Abkühlung jener Massen, welche die Erdrinde bildeten, und ebenso sind die chemischen, physikalischen, morphologischen Eigenschaften der lebendigen Substanz von heute die notwendige Folge der Einwirkung unserer jetzigen äußeren Lebensbedingungen auf die inneren Verhältnisse der früheren lebendigen Substanz. Innere und äußere Lebensbedingungen stehen in einer untrennbaren Wechselwirkung, und der Ausdruck dieser Wechselwirkung ist das Leben.
III. Die Geschichte des Todes.
Der Punkt, in dem unsere Betrachtung der Lebensbedingungen gipfelte, war die Tatsache, daß das Leben nur bestehen kann, aber auch entstehen muß, mit derselben unabwendbaren Notwendigkeit wie jeder andere Naturvorgang, wenn ein bestimmter Komplex von Bedingungen erfüllt ist. Fehlen diese Bedingungen, so fehlt auch das Leben.
Die Entstehung des Lebens auf der Erde war nur die eine Konsequenz aus dieser Tatsache. Die andere, die wir jetzt ins Auge fassen wollen, ist die Entwicklung des Todes.
A. Die Vorgänge der Nekrobiose.
Fällt eine, mehrere oder alle Lebensbedingungen unter den speziellen Verhältnissen, unter denen sich irgendein Organismus befindet, aus, so hören die Lebensäußerungen auf; das Leben steht still. Dieser Stillstand ist, abgesehen von den wenigen Fällen des latenten Lebens, stets der Tod. Aber, wie wir schon bei anderer Gelegenheit sahen[318], tritt der Tod nie unvermittelt ein. Es gibt keine scharfe Grenze, die Leben und Tod voneinander scheidet, es findet vielmehr ein allmählicher Uebergang statt zwischen Leben und Tod: der Tod entwickelt sich. Gesundes Leben einerseits und Tod anderseits sind nur die äußersten Endglieder dieser Entwicklung, die durch eine Reihe von Zwischenstadien lückenlos miteinander verbunden sind. Beide Endstadien lassen sich wohl leicht und scharf voneinander unterscheiden, aber eine scharfe Grenze zu ziehen da, wo der Tod beginnt und das Leben aufhört, ist unmöglich. Deshalb bezeichnen wir mit einem Worte, das von K. H. SCHULTZ und VIRCHOW in die Pathologie eingeführt wurde, diesen Uebergang vom Leben zum Tod als „Nekrobiose“. Zwar unterscheidet VIRCHOW[319] zwischen Nekrobiose und Nekrose nach äußeren Gesichtspunkten in der Weise, daß er von Nekrobiose spricht, wenn der betroffene Teil später in seiner Form vollständig zerstört und untergegangen ist, von Nekrose dagegen, wenn er in seiner ursprünglichen Gestalt im Tode noch bestehen bleibt; allein so praktisch dieser äußere Unterschied für die Beurteilung grober Verhältnisse, ganzer Organe oder Gewebe etc. sein mag, so wenig Bedeutung hat er für die theoretische Auffassung des Vorgangs selbst, denn es hängt häufig von ganz nebensächlichen Momenten ab, ob der Enderfolg sich in dieser oder jener Weise gestaltet. Hat z. B. eine Zelle eine feste Membran, so bleibt ihre Form, während der Protoplasmakörper schon längst abgestorben ist, noch lange erhalten; ist ihr Protoplasma aber nackt, so zerfällt die Zelle in der Regel zu einem formlosen Häufchen von Körnern, und doch kann das Wesen des Prozesses, der zum Tode führt, in beiden Fällen das gleiche sein. Daher scheint es zweckmäßiger, diese für grobe Verhältnisse praktische Unterscheidung fallen zu lassen und den Begriff der Nekrobiose so weit zu fassen, daß er auch die sogenannten nekrotischen Prozesse mit einschließt. Dann verstehen wir unter Nekrobiose diejenigen Prozesse, die, mit einer unheilbaren Schädigung des normalen Lebens beginnend, schneller oder langsamer zum unvermeidlichen Tode führen. Der damit vielfach synonym gebrauchte Begriff der Degeneration hat den Nachteil, daß er nicht eindeutig ist und auf viele ganz verschiedenartige Dinge Anwendung findet.
Mit den Tatsachen der Nekrobiose sind wir bereits auf ein Gebiet gelangt, das sich wegen seiner enorm praktischen Bedeutung als selbständige Wissenschaft entwickelt und einen ungeheuren Umfang angenommen hat; das ist die Lehre von den Krankheiten, die Pathologie. Unsere folgende Betrachtung wird sich daher zum großen Teil auf diesem Gebiete bewegen und die Wege aufsuchen, welche in das Schattenreich des Todes führen.
Da die Zelle der eigentliche Sitz des Lebens ist, so muß die Zelle ebenso, wie sie für die Erforschung der Lebensäußerungen den Angriffspunkt vorstellt, auch das Objekt für die Untersuchung der Nekrobiose abgeben. Der Tod der großen Organismen mit ihren weitdifferenzierten Organen und Geweben beruht ja lediglich auf dem Absterben der einzelnen Zellen, die den Zellenstaat des Organismus zusammensetzen. In den einzelnen Zellformen aber verlaufen die Vorgänge, die zum Tode führen, sehr verschieden. Das hängt einerseits von der Beschaffenheit der lebendigen Substanz ab, die jede einzelne Zellform charakterisiert, anderseits von der Art und Weise der Faktoren, die den Tod der Zelle bedingen. Es liegt also auf der Hand, daß daraus eine große Mannigfaltigkeit der Absterbeprozesse resultieren muß. Immerhin kann man die Vorgänge der Nekrobiose in zwei große Gruppen bringen, die sich fundamental voneinander unterscheiden. Die eine Gruppe dieser Vorgänge besteht darin, daß die normalen Lebensprozesse nach und nach ausfallen, ohne vorher eine wesentliche Aenderung zu erfahren; wir können diese Prozesse als histolytische Prozesse bezeichnen. Die andere Gruppe ist dieser gegenüber dadurch charakterisiert, daß die normalen Lebensprozesse durch die tödliche Schädigung in eine perverse Bahn gelenkt werden und entarten, ehe sie vollständig stillstehen. Diese Prozesse nennen wir metamorphotische Prozesse.
1. Histolytische Prozesse.
Die einfachsten Formen der histolytischen Prozesse sind die „Atrophien“. Es sind meist chronisch verlaufende Prozesse, die darin bestehen, daß die aufsteigende Phase des Stoffwechsels der betroffenen Zellen, also die Vorgänge, die zum Aufbau und zur Neubildung der lebendigen Substanz führen, immer mehr und mehr an Umfang abnehmen, bis sie schließlich ganz aufhören. Die Folge davon ist, daß die lebendige Substanz, die sich ja in gewissem Maße fortwährend von selbst zersetzt, mehr und mehr an Menge einbüßt, so daß die Zelle immer kleiner wird, bis der Rest, wenn es zum Extrem kommt, schließlich zerfällt. Man sagt: die Zelle oder das Gewebe „atrophiert“.
Die Fälle von Atrophie eines Organs oder Gewebes sind im ganzen Organismenreich weit verbreitet und spielen sowohl in der normalen Entwicklung der Tiere als auch unter pathologischen Verhältnissen eine große Rolle.
Die klarsten Beispiele für atrophische Prozesse liefert der Hunger. Die oben beschriebenen Veränderungen, die sich bei Nahrungsentziehung an den einzelnen Zellen sowohl wie an den verschiedenen Geweben und Organen vollziehen, gehören hierher (vergl. p. 324).
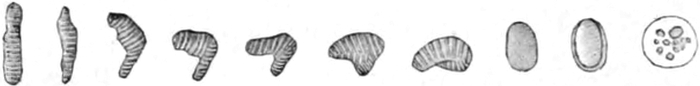
Fig. 152.
Histolyse der Muskelfasern im Schwanz der Froschlarve
. Nach L
OOSS
.
Unter den Fällen der Atrophie, die in der Entwicklung des normalen Organismus auftreten, sind vor allem bekannt die Vorgänge der Histolyse oder Rückbildung embryonaler Organe, die besonders für die Tiere mit ausgesprochener „Metamorphose“ oder Larvenentwicklung charakteristisch sind. Diese histolytischen Prozesse sind hauptsächlich an dem atrophierenden Schwanze der Froschlarven (Kaulquappen) von LOOSS[320] genauer verfolgt worden. Die Histolyse verläuft in ihren wesentlichen Momenten bei den verschiedenen Zellformen übereinstimmend. Zuerst macht sich eine Auflockerung der die Zellen untereinander zum Gewebe verbindenden Kittsubstanz bemerkbar, so daß die Zellen lockerer aneinanderhängen. Währenddessen aber beginnt auch schon eine sichtbare Veränderung im Protoplasma der Zellen selbst. „Die Zellsubstanz gibt ihre normale charakteristische Struktur auf: Das ursprünglich in Form eines mehr oder weniger ausgeprägten Schwammgerüstes vorhandene, meist stärker färbbare Spongioplasma zieht sich zusammen, die einzelnen Balken werden gröber, und schließlich zerfällt das Ganze in eine größere oder kleinere Anzahl von kugelrunden Tröpfchen, die innerhalb des weniger oder gar nicht gefärbten Hyaloplasmas liegen, das seinerseits ebenfalls zu einer einheitlichen Masse sich vereinigt hat.“ Die Grundsubstanz, in der diese Kügelchen liegen, beginnt sich zuerst aufzulösen, und erst später verflüssigen sich auch diese Kügelchen selbst. So bleiben schließlich vom ganzen Protoplasma nur noch einige Körnchen übrig, die von den als Freßzellen in allen Geweben umherkriechenden Leukocyten aufgefressen werden. Die Kerne der Zellen halten dem Zerfall meist bedeutend länger stand, werden aber schließlich auch Opfer eines ganz ähnlichen Prozesses. Ihre Grundsubstanz verschwindet sehr bald, die chromatische Substanz und die Kernmembran schrumpfen mehr und mehr zusammen und zerfallen in einzelne Bröckel, die sich zuletzt ebenfalls auflösen. Ganz ähnlich verhalten sich auch die sonst ziemlich differenten Muskelfasern. Die einzelnen Fibrillen quellen auf und verkleben untereinander. Dabei beginnt sich die isotrope und anisotrope Substanz untereinander zu vermischen, so daß die Querscheibe allmählich verschwindet. Auch die Doppelbrechung der anisotropen Schichten erlischt. Gleichzeitig zerfallen die Muskelfasern in kleinere rundliche Trümmer, die schließlich ebenfalls der Auflösung anheimfallen (Fig. 152). In ganz analoger Weise dürften die Prozesse der Histolyse auch in den meisten anderen Fällen verlaufen, z. B. bei der Rückbildung der larvalen Organe der Insekten, der Muskeln des Lachses, der Thymusdrüse des Menschen etc. Jedoch geht aus den Untersuchungen von METSCHNIKOFF[321], KOWALEVSKY[322] u. a. hervor, daß bei manchen Insekten, besonders bei Fliegenmaden, wo die Rückbildung der larvalen Gewebe besonders schnell vor sich geht, die Histolyse wesentlich von den Leukocyten mit besorgt wird, indem diese kleinen „Phagocyten“ die noch nicht zerfallenen Gewebezellen auffressen. Immerhin wird man auch hier voraussetzen müssen, daß die Einleitung der Histolyse von seiten der Gewebezellen selbst ausgeht, und daß die Leukocyten erst die bereits zu atrophieren beginnenden Zellen auffressen. Der ganze Unterschied liegt dann, wie das auch KOROTNEFF[323] hervorgehoben hat, darin, daß da, wo es sich um eine möglichst schnelle Beseitigung der Gewebe handelt, die Leukocyten eine energischere Tätigkeit entfalten und früher damit beginnen. Zu den Atrophien im normalen Leben gehören ferner auch die Vorgänge der „senilen Atrophie“, die in einer sehr langsamen und stetig fortschreitenden Rückbildung der verschiedenen Gewebe besteht und im höheren Greisenalter niemals ausbleibt.
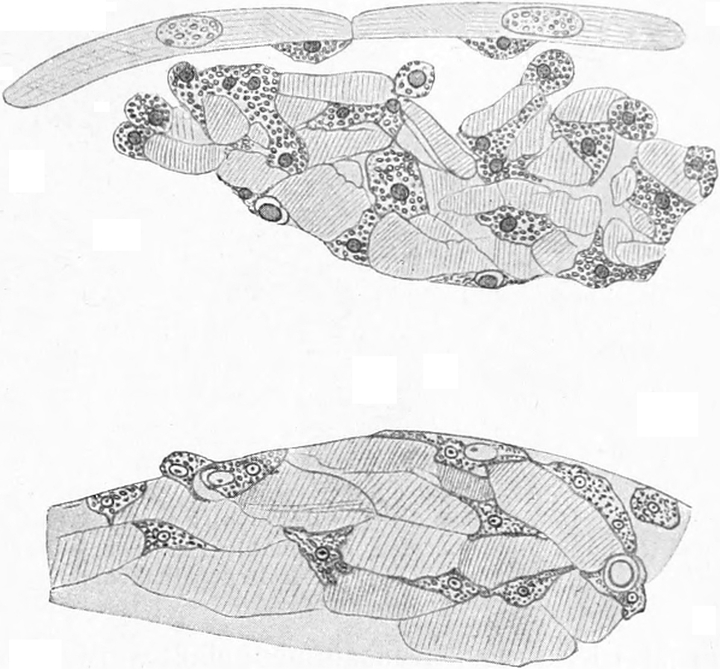
Fig. 153. Muskelfaserfragmente bei der Metamorphose der Fliegenmade von Leukocyten zerstört. Die dunkleren, grau gekörnten Zellen sind die Leukocyten. Nach KOWALEVSKY.
Den normalen Atrophien reihen sich die pathologischen an, die am Organismus auftreten, wenn Erkrankungen die geeigneten Bedingungen dafür geschaffen haben. So atrophieren z. B. die Muskeln des Unterschenkels beim Menschen, wenn das Kniegelenk infolge einer Erkrankung verknöchert und unbeweglich geworden ist. Solche Atrophien, die infolge des Nichtgebrauchs eines Organes eintreten, werden als „Inaktivitätsatrophien“ bezeichnet. Die Prozesse bei diesen pathologischen Atrophien sind im großen und ganzen dieselben, die wir bereits kennen gelernt haben, doch zeigen sich bisweilen noch einige merkwürdige Einzelheiten. So hat man z. B. vielfach in Muskeln, die infolge irgendeiner Krankheit atrophierten, eine ganz ungeheure Vermehrung der Muskelkerne gefunden, während Looss mit Sicherheit feststellen konnte, daß bei der Muskelatrophie des Kaulquappenschwanzes die Kerne weder vermehrt noch vermindert waren. Ferner sind die infolge von Krankheiten atrophierenden Gewebe in der Regel anfangs viel fester und derber als die Gewebe, die der normalen Histolyse verfallen, ein Umstand, der vielleicht in der bedeutend längeren Dauer der pathologischen Atrophie begründet ist, bei der die aufgelösten Massen mehr Zeit haben, abzufließen. Allein, das sind alles nur speziellere, akzessorische Momente. Die Nekrobiose der Leukocyten hat besonders GUMPRECHT[324] bei der akuten Leukämie verfolgt. Sie ist insofern interessant, als sich dabei die Auflösung des Zellkerns in einer sehr einfachen Weise vollzieht. Die Kernmembran geht zugrunde, der Inhalt des Kerns mischt sich mit dem Protoplasma, die chromatische Substanz wird blasser und blasser, bis der ganze Leukocyt eine homogene Masse vorstellt, die unter Aufquellung und Vakuolenbildung zerfließt (Fig. 154).
Den Atrophien können wir eine Reihe von Absterbeprozessen anfügen, die in der Pathologie unter dem gemeinschaftlichen Namen der „Nekrosen“[325] zusammengefaßt werden, obwohl sie wenig Aehnlichkeit untereinander haben, die aber im allgemeinen mehr akut verlaufen als die Atrophien.
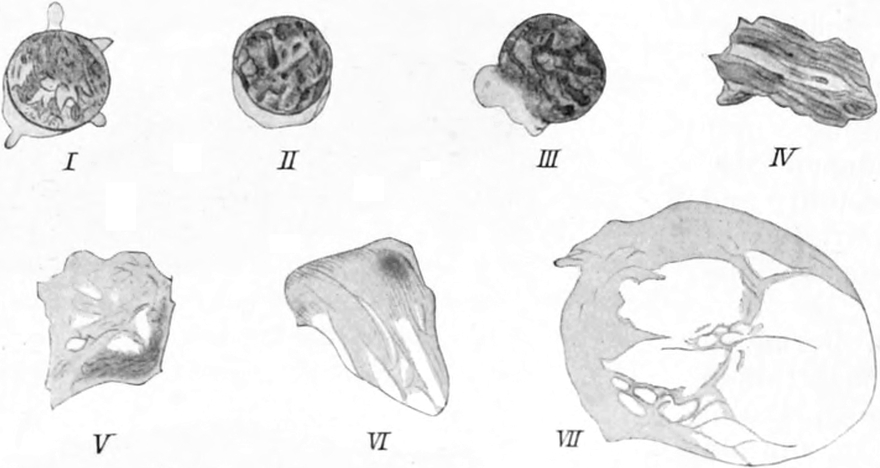
Fig. 154.
Nekrobiose der Leukocyten bei akuter Leukämie
.
I
und
II
normale Leukocyten, die dunkle Masse der Zellkern, der helle Saum das Protoplasma.
III
–
VII
Auflösungsstadien. Nach G
UMPRECHT
.
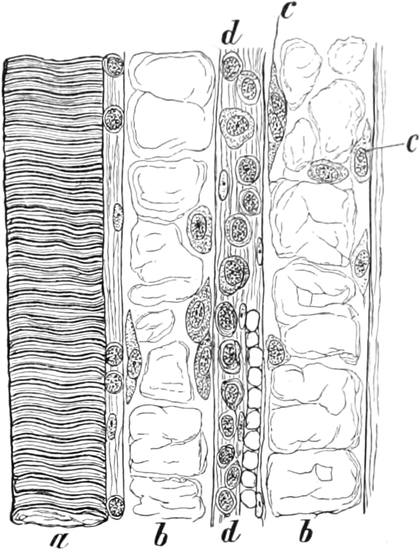
Fig. 155.
Wachsartige Degeneration der Muskeln bei Typhus abdominalis
.
a
Quergestreifte, normale Muskelfaser,
b
in wachsartige Schollen zerfallene Fasern,
c
Muskelkerne,
d
Bindegewebe. Nach Z
IEGLER
.
Unter den verschiedenen nekrotischen Prozessen können wir mehrere Hauptformen unterscheiden, die durch bestimmte Eigentümlichkeiten charakterisiert sind. Eine dieser Hauptformen ist die Vertrocknung oder der „trockene Brand“. Bei dieser Form der Nekrose schrumpfen die Gewebezellen unter Flüssigkeitsverlust zu festen, lederartigen Massen zusammen, so daß die Gewebe trocken, hart und bröcklig geworden sind, wenn der Prozeß sein Ende erreicht hat. Die Vertrocknung kommt sowohl normal vor beim Eintrocknen des Nabelschnurrestes der neugeborenen Kinder als auch unter pathologischen Verhältnissen, wie z. B. nach Verbrennen oder Erfrieren der Finger- und Zehenspitzen, besonders im Greisenalter, sowie bei der Mumifikation von Embryonen, die sich, statt im Uterus, in der Bauchhöhle des Tieres oder Menschen entwickeln und, da sie nicht geboren werden können, im Leibe der Mutter absterben. Solche Embryonen nehmen allmählich eine harte, mumienartige Konsistenz an, weil die in ihnen enthaltene Flüssigkeit vom mütterlichen Körper resorbiert wird. Eine zweite Hauptform der Nekrose ist die zuerst von WEIGERT[326] eingehend untersuchte Koagulationsnekrose und besteht darin, daß die Eiweißkörper der betreffenden Gewebezellen gerinnen. Man kann zu den Koagulationsnekrosen schon die gewöhnliche Totenstarre der absterbenden Muskeln rechnen, obwohl WEIGERT selbst sie davon trennt, da er für das Zustandekommen der Koagulationsnekrosen die Mitwirkung von Lymphe für unerläßlich hält. Allein im Prinzip haben wir schon bei der Totenstarre, die den absterbenden Muskel unter allmählicher Kontraktion in ein starres Organ verwandelt und so die steife und starre Beschaffenheit der Leichen bedingt, wenn auch vorübergehend, denselben Vorgang; denn das Myosin, der für den Muskel charakteristische Eiweißkörper, der im lebendigen Muskel gelöst enthalten ist, gerinnt beim Absterben und erzeugt so die Totenstarre, die sich dann erst infolge anderer Umsetzungen im Muskel unter Erschlaffung desselben wieder löst. Aber auch eine typische Koagulationsnekrose im Sinne WEIGERTs kommt unter pathologischen Verhältnissen, besonders im Anschluß an fieberhafte Krankheiten, wie Typhus etc., beim Muskel vor: das ist die sogenannte „wachsartige Degeneration“, die in einer Gerinnung der Muskelsubstanz unter Verlust ihrer Querstreifung und Zerklüftung in wächsern aussehende Schollen besteht (Fig. 155). Aehnliche Koagulationsprozesse treten auch in den anderen Gewebezellen, besonders bei starken Entzündungen der Schleimhäute, wie bei Diphtherie des Rachens etc., auf. Zu den Koagulationsnekrosen im weiteren Sinne können wir schließlich auch diejenigen Formen des Zelltodes rechnen, die eintreten, wenn wir lebendige Gewebe behufs anatomischer oder histologischer Konservierung mit Gerinnung erzeugenden Flüssigkeiten, wie Mineralsäuren, Alkohol, Sublimat etc., übergießen. Das sind die akutesten Fälle des Zelltodes überhaupt, und gerade darum eignen sich diese Flüssigkeiten zum Abtöten und Konservieren besonders gut, denn die lebendige Zelle wird hierbei plötzlich vom Tode überrascht, so daß sie nicht erst Zeit hat, sich in tiefergehender Weise zu verändern, sondern in einer den lebendigen Verhältnissen ziemlich ähnlichen Beschaffenheit momentan fixiert wird. Eine dritte Form der Nekrose, die Kolliquation, verläuft so, daß eine vollkommene Verflüssigung der betroffenen Gewebezellen eintritt, indem ihr Protoplasma in einen körnigen Detritus zerfällt, und die Zellkerne und Zellgrenzen sich auflösen, bis das Gewebe in einen flüssigen Brei umgewandelt ist. Solche Erweichungen kommen namentlich bei der Blasenbildung nach Verbrennung zustande (Fig. 156) und können sich häufig mit Koagulationsvorgängen kombinieren. Ueberhaupt kommen nicht selten verschiedene Formen der Nekrose kombiniert vor, und besonders werden sie noch durch sekundäre Momente kompliziert, wie z. B. durch die Fäulnis. Im letzteren Falle entstehen die Nekroseformen des feuchten Brandes, der Gangrän, der Verwesung etc., die alle durch die Einwirkung von Fäulnisbakterien auf nekrobiotische Gewebe hervorgerufen werden und zum Teil erst postmortale Veränderungen vorstellen. Es sind weiterhin noch manche andere Formen der Nekrose mehr oder weniger gut von der Pathologie charakterisiert worden, indessen beruhen diese Begriffe der Pathologie weniger auf der Untersuchung der mikroskopischen Vorgänge in der Zelle selbst als vielmehr auf dem makroskopischen Bilde des Endergebnisses, das naturgemäß von den verschiedensten, nicht durch die reinen Vorgänge des Zellentodes unmittelbar bedingten Nebenumständen abhängig ist.
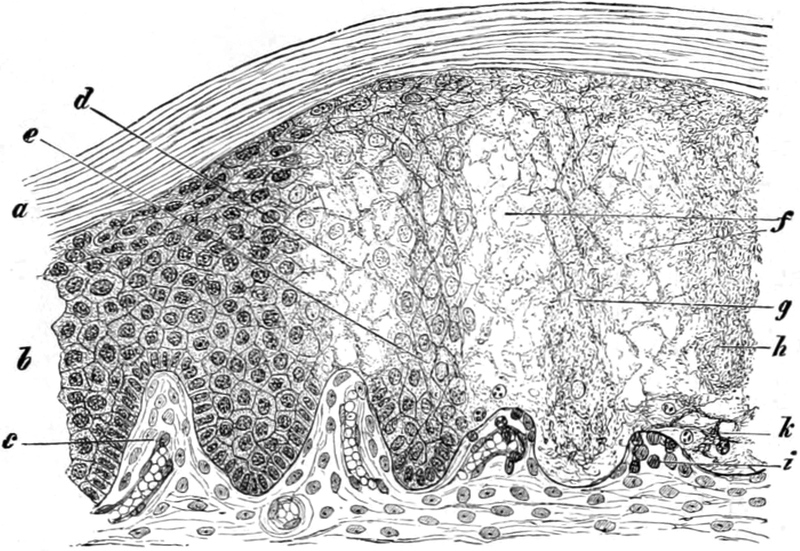
Fig. 156.
Kolliquation am Rande einer Brandblase
.
a
Hornschicht der Epidermis,
b
Rete Malpighii der Epidermis,
c
normale Hautpapillen,
d
aufgequollene und zum Teil schon verflüssigte Zellen,
e
teilweise noch normale Zellen,
f
Verflüssigungsherd,
g
und
h
aufgequollene Zellen mit zerstörtem Kern,
i
eingesunkene Papillen,
k
geronnenes Exsudat. Nach Z
IEGLER
.
Endlich können wir den Atrophien und Nekrosen noch eine Reihe von Vorgängen anschließen, die sich beim Absterben von Zellen in wässerigen Medien in der ganzen Organismenwelt weit verbreitet finden: das sind die Vorgänge des körnigen Zerfalls[327]. Das Gemeinschaftliche aller Arten des körnigen Zerfalls liegt darin, daß am Ende des Prozesses die betroffene Zelle einen mehr oder weniger lose zusammenhängenden Haufen von einzelnen Körnchen bildet.
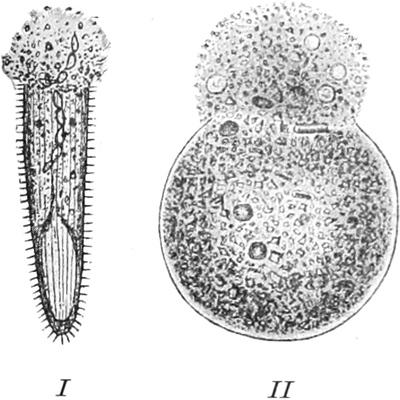
Fig. 157.
Körniger Zerfall
.
I
Stück eines
Spirostomums
von der Wundstelle her zerfallend.
II
Pelomyxa
auf Ueberreizung von einer Seite her zerfallend.
Am leichtesten können wir den körnigen Zerfall bei manchen Infusorien beobachten, wenn ihr Protoplasma besonders wasserreich ist. Das ist z. B. bei dem großen walzenförmigen Spirostomum ambiguum der Fall, das außerdem eine sehr wenig feste Oberflächenschicht seines Exoplasmas besitzt. Bringt man solchen Infusorien eine Wunde bei, indem man sie unter dem Mikroskop durch einen Schnitt in zwei Teile schneidet, so ereignet es sich sehr häufig, daß die Teilstücke von der Wundfläche her förmlich zerstieben. Man kann den Tod mit den Augen verfolgen, wie er, einem glimmenden Funken gleich, der an einer Zündschnur dahinläuft und nur ein loses Aschenhäufchen hinter sich zurückläßt, über den ganzen Infusorienkörper kriecht, Teilchen nach Teilchen ergreifend, Wimper nach Wimper in ihrer ungestörten Tätigkeit überraschend und mitten aus dem Leben zum ewigen Stillstand zwingend, bis in einen toten Körnerhaufen verwandelt ist, was eben noch in lebendiger Bewegung begriffen war (Fig. 157).
Indessen diese sehr akut verlaufenden Fälle an Infusorienzellen, die das Interesse jedes Beobachters fesseln, der sie zum ersten Male sieht, sind für das Studium der feineren Vorgänge im Protoplasma deshalb nicht sehr geeignet, weil es sich bei der schon von vornherein sehr körnerreichen Beschaffenheit des Protoplasmas nur schwer entscheiden läßt, wie weit das Körnermaterial der zerfallenen Massen sich aus den schon präformierten Körnern zusammensetzt, und wie weit es als solches erst direkt durch den Absterbeprozeß gebildet wird. Außerordentlich günstig sind dagegen in dieser Beziehung die vollkommen hyalinen und körnerfreien Protoplasmamassen mancher Rhizopoden, z. B. des marinen Hyalopus Dujardinii (Fig. 158 I). Schneidet man unter dem Mikroskop mit einem feinen Messer eines der glatten, wasserklaren Pseudopodien ab, so beginnt dasselbe von der Schnittstelle her allmählich mehr und mehr zu zerfallen (Fig. 158 II und III). Je nach der Dicke und Größe der abgeschnittenen Masse sieht man dann entweder bald oder erst im Verlauf einiger Stunden statt der durchsichtigen Protoplasmamasse einen Haufen von kleinen Körnchen und Kügelchen, zwischen denen noch vereinzelt etwas größere runde Tröpfchen von hyalinem Protoplasma (Fig. 158 III D, b) sowie bisweilen eine oder wenige matte runde durchsichtige Blasen (Fig. 158 III D, a) liegen, alles locker zusammengehalten durch eine sehr feine, lose, schleimige Masse. Hier ist also jeder Zweifel ausgeschlossen, daß dieser Haufen von Körnchen und Kügelchen entstanden ist durch Umbildung einer ursprünglich vollkommen klaren Masse lebendiger Substanz. Eine interessante Tatsache zeigt sich aber erst bei Untersuchung dieses Prozesses mit stärkeren Vergrößerungen. Die Pseudopodien des Hyalopus lassen nämlich im normalen Leben der Zelle schon einen charakteristischen Unterschied in dem Verhalten ihres Protoplasmas bei der Expansionsphase einerseits und der Kontraktionsphase anderseits erkennen. Während das Protoplasma bei der Ausstreckung vollkommen homogen aussieht, nimmt es bei der Einziehung die typische Wabenstruktur im Sinne BÜTSCHLIs[328] an und wird, wenn die Kontraktion, z. B. infolge einer Reizung, sehr stark wird, an der Oberfläche höckerig und wulstig (Fig. 158 V und VI). Bei der Entwicklung des körnigen Zerfalls zeigt sich nun genau derselbe Vorgang wie bei der Kontraktion: das Protoplasma beginnt Wabenstruktur anzunehmen. Das ist die Einleitung des körnigen Zerfalls, denn die Wabenwände ziehen sich nun mehr und mehr höckerig und klumpig zusammen, zerreißen hier und da und runden sich schließlich zu kleinen Kügelchen und Tröpfchen ab, die nur durch die schleimige Flüssigkeit der geplatzten Vakuolen, die häufig zu einer größeren Schleimblase zusammenfließt, als loser Körnerhaufen aneinandergehalten werden (Fig. 158 IV). Hier stellt also der körnige Zerfall gewissermaßen eine über das Maximum hinaus entwickelte Kontraktion vor.
Fig. 158.
Hyalopus (Gromia) Dujardinii, körniger Zerfall
.
I
Ganzes Individuum. Aus der eiförmigen, membranartigen Schale ragen zahlreiche Pseudopodien hervor, die links in Einziehung begriffen sind.
II
und
III
abgeschnittene Pseudopodien, an denen sich der körnige Zerfall entwickelt. Die Protoplasmakügelchen und -tröpfchen werden nur noch durch eine lockere, schleimige Bindemasse lose zusammengehalten. Zwischen ihnen zerstreut liegen noch einzelne größere hyaline Protoplasmatröpfchen (
III
D
b
), sowie einzelne größere Schleimkugeln (
III
D
a
).
IV
Pseudopodium, das bei
a
abgeschnitten ist und von hier aus körnig zerfällt. Stärkere Vergrößerung. Bei
a
ist der körnige Zerfall schon vollständig, die Kugeln sind schon isoliert, bei
b
erst der Beginn des Zerfalls, der durch die Vakuolenbildung eingeleitet wird. Zwischen beiden Punkten alle Uebergangsstufen.
V
Schalenöffnung des Hyalopus mit ausgestreckten Pseudopodien, von denen drei an der Stelle des Pfeiles gereizt sind und einen höckerigen Kontur angenommen haben.
VI
Reizstelle eines Pseudopodiums stärker vergrößert. Man sieht Vakuolen, deren Wandprotoplasma sich höckerig und klumpig zusammengezogen hat. Der Vergleich zeigt die Uebereinstimmung mit
IV
.
⇒ GRÖSSERES BILD
Fig. 159.
I
Amöbe
,
A
normal,
B
in der Nekrobiose.
II
Leukocyt
,
A
normal,
B
in der Nekrobiose.
Diese Tatsache ist von großem Interesse; denn wenn wir vergleichend die histolytischen Prozesse an verschiedenen Zellen verfolgen, so finden wir das gemeinsame Gesetz, daß alle Elemente, deren Kontraktilität deutlich zum Ausdruck kommen kann, also vor allem sämtliche nackten Protoplasmamassen, wie Rhizopoden, Protoplasmatropfen von Gewebezellen etc., ferner kontraktile Fibrillen, Muskelfasern etc., ausnahmslos in der Kontraktionsphase absterben. Amöben und Leukocyten nehmen, wie bei jeder Kontraktion, mehr oder weniger vollkommene Kugelgestalt an (Fig. 159 B); Rhizopoden mit langen Pseudopodien ziehen ihre Pseudopodien ein und werden klumpig, oder die fadenförmigen Pseudopodien werden varikös und zerfallen selbst zu kleinen Kügelchen (Fig. 160). Protoplasmafetzen aus dem Innern irgendwelcher formbeständigen Zellen, etwa Pflanzenzellen oder Gewebezellen oder auch freilebender Zellen, runden sich stets zu kugeligen Tropfen ab (Fig. 46 a p. 131). Kontraktile Fibrillen und Muskelfasern gehen in Totenstarre über, d. h. sie kontrahieren sich noch ein letztes Mal (p. 158), und erst wenn die Totenstarre vorbei, wenn der Tod vollendet ist, werden sie passiv wieder gestreckt durch die Wirkung elastischer Elemente. Kurz, überall finden wir, daß alles Protoplasma, dessen Kontraktilität überhaupt zum Ausdruck kommen kann, im Kontraktionszustande abstirbt.
Es wäre ein sehr lohnendes Unternehmen, auch noch andere, allen histolytischen Prozessen gemeinsame Eigentümlichkeiten durch eine vergleichende Untersuchung der nekrobiotischen Vorgänge festzustellen, wobei, wie ISRAEL[329] in seinen Untersuchungen über den Tod der Zelle mit Recht hervorgehoben hat, die Bedingungen des Todes und die Dauer der Nekrobiose besonders zu berücksichtigen wären. Nur durch eine vergleichende Geschichte des Todes kann ein Verständnis der nekrobiotischen Vorgänge, das bis jetzt noch wenig entwickelt ist, mit der Zeit erhofft und damit zugleich auch die Kenntnis des Lebensvorgangs selbst gefördert werden.
2. Metamorphotische Prozesse.
Die metamorphotischen Prozesse sind den einfachen histolytischen Vorgängen gegenüber sehr deutlich dadurch charakterisiert, daß der Stoffwechsel der Zelle nicht einfach mehr oder weniger langsam oder plötzlich stehen bleibt, sondern daß er vorher in eine perverse Bahn einlenkt, in der Weise, daß Stoffe, die in der normalen Zelle entweder gar nicht gefunden werden oder nur als Zwischenstufen auftreten, infolge einer Stoffwechselstörung in größerer Menge von der Zelle aufgehäuft werden, bis die Zelle zugrunde gegangen ist. Die häufigsten, bekanntesten und für die Pathologie wichtigsten Formen der metamorphotischen Prozesse sind die „fettige Degeneration“ oder „Fettmetamorphose“, die „schleimige Degeneration“, die „amyloide Degeneration“ und die „Verkalkung“.
Fig. 160.
Nekrobiose einer kernlosen Protoplasmamasse von Orbitolites
.
a
Die Protoplasmamasse hat noch normale Pseudopodien ausgestreckt;
b
die Pseudopodien werden varikös und teilweise eingezogen;
c
das Protoplasma der nicht eingezogenen Pseudopodien ist zu Tropfen und Kugeln zerfallen.
Wenn wir zunächst die Tatsachen der Fettmetamorphose ins Auge fassen, so müssen wir, wie bereits an anderer Stelle (p. 197) bemerkt, noch immer die Frage offen lassen, ob es sich hier um Fett handelt, das im Stoffwechsel der Zelle aus anderen Zellbestandteilen, speziell aus Eiweißverbindungen gebildet ist oder, wie es in neuerer Zeit wahrscheinlicher geworden ist, um Fett, das, sei es als solches, sei es in Form seiner Konstituenten von außen her in die Zelle eingewandert ist. In beiden Fällen aber würde eine Veränderung im Stoffwechselgetriebe der Zelle vorliegen, die eben ihren Ausdruck darin findet, daß Fett in der Zelle zur Anhäufung gelangt. In vielen Fällen wissen wir sicher, daß es sich bei dem Auftreten von Fett in gewissen Zellen um eine Einwanderung des Fettes oder seiner Konstituenten von außen her handelt, also um eine „Fettinfiltration“. Eine solche finden wir unter physiologischen Verhältnissen in den Zellen des Unterhautbindegewebes. Sie kann aber auch hier schon pathologisch auftreten, wenn sie, wie bei der Mästung oder bei der Fettsucht, abnorme Dimensionen annimmt. Wird dem Körper durch die Nahrung viel Fett zugeführt oder Material, aus dem Fett gebildet werden kann, so lagert sich dieses „Mästungsfett“ mit Vorliebe an bestimmten Orten des Körpers innerhalb der Zellen ab, so z. B. in den Zellen des Unterhautbindegewebes, und so entsteht die Fettleibigkeit, der „panniculus adiposus“. Die eigentlich pathologischen Fälle der Fettmetamorphose aber bestehen darin, daß Zellen, in denen sonst niemals Fett zur Ablagerung kommt, unter allmählich immer mehr und mehr zunehmender Fettanhäufung im Protoplasma zugrunde gehen. Auch diese eigentliche Form der Fettmetamorphose, die mit dem Tode und Zerfall der Zelle endigt, kommt in einem Falle schon als normaler Vorgang im gesunden Körper vor, nämlich in den Zellen der Milchdrüsen zur Zeit, wenn dieselben Milch sezernieren, wenn die Frau stillt. Zu dieser Zeit findet man, wie in den Drüsenläppchen der Brüste die älteren Zellen in ihrem Protoplasma mikroskopische Fetttröpfchen erkennen lassen (Fig. 161), die immer mehr und mehr an Zahl zunehmen, während das Protoplasma selbst allmählich abstirbt, bis die Zelle zu einem rundlichen Tröpfchen geworden ist, das voller kleiner Milchkügelchen steckt. Das abgestorbene Protoplasma zerfällt allmählich, die Fettkügelchen werden frei, und die ganzen Massen, d. h. die Fettkügelchen in ihrer Flüssigkeit, werden sezerniert als „Milch“, denn die Milch ist weiter nichts als eine Emulsion von Butterfett in einer Lösung von Salzen, Eiweißkörpern, Zucker etc. Den alten, fettig zerfallenen Drüsenzellen rücken die jüngeren nach. Diese machen dieselben Veränderungen durch, und so geht der Prozeß der Milchbildung ununterbrochen in größtem Umfange weiter. Was in den Zellen der Milchdrüsen als normaler Prozeß auftritt, kommt aber unter pathologischen Verhältnissen in viel größerer Verbreitung in den verschiedensten Geweben vor und führt fast immer zu unheilbaren und tödlichen Verlusten, weil durch jüngere, nachrückende Zellen in der Regel kein Ersatz geschaffen wird. „Wenn jemand“ — sagt VIRCHOW[330] — „statt in der Milchdrüse im Gehirn Milch fabriziert, so gibt dies eine Form der Hirnerweichung. Derselbe Prozeß, welcher an einem Orte die glücklichsten, ja die süßesten Resultate liefert, bringt an einem anderen einen schmerzlichen und bitteren Schaden mit sich.“ Namentlich treten solche Fettmetamorphosen bei langandauernden chronischen Krankheiten, wie Tuberkulose, Herzkrankheiten, Nierenkrankheiten etc., in Niere, Herz, Leber etc. auf (Fig. 162), und ihre Bedingungen liegen immer in Ernährungsstörungen der Zellen, vor allem in der Störung der Sauerstoffzufuhr durch das Blut. Steht nämlich der Zelle nicht genug Sauerstoff zur Verfügung, oder ist ihre Sauerstoffaufnahmefähigkeit herabgesetzt, so wird das Fett, das in geringen Mengen wahrscheinlich den meisten Zellen zugeführt wird, nicht, wie es normalerweise geschieht, verbrannt, d. h. oxydiert, sondern es kommt zur Ablagerung und häuft sich zu großen Mengen an. Deshalb tritt auch bei Gewohnheitstrinkern und nach Phosphorvergiftung, wo infolge des aufgenommenen Alkohols oder Phosphors die Sauerstoffaufnahme verringert ist, stets eine bedeutende Fettmetamorphose der Gewebe, besonders der Leberzellen, ein, und die Pathologie kennt eine ganze Reihe von Fällen, in denen sich die Fettmetamorphose auf die gleichen Bedingungen zurückführen läßt.
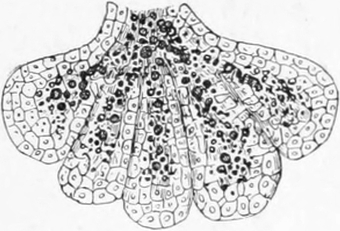
Fig. 161.
Fig. 162.
Fig. 161. Fettmetamorphose bei der Milchbildung in den Drüsenläppchen der Brustdrüse. Nach VIRCHOW.
Fig. 162. Fettmetamorphose der Herzmuskelzellen. Die Körnchen in den Zellen bestehen aus Fett. Nach ZIEGLER.
Fig. 163.
Schleimzellen
.
A
Drei isolierte Schleimzellen.
B
Sieben zusammenhängende Schleimzellen, von denen die drei linken voll, die vier rechten entleert sind. Nach S
CHIEFFERDECKER
.
Die Tatsachen der Schleimmetamorphose bilden in gewisser Weise ein Gegenstück zu denen der Fettmetamorphose. Wie bei der letzteren in der lebendigen Substanz der Zelle Fett aufgehäuft wird, so tritt bei der ersteren Schleim auf. In vielen Fällen ist der entstehende Schleim echtes Mucin, in anderen sind es Mucinoidsubstanzen, immer aber handelt es sich dabei um Verbindungen von Eiweißkörpern. Meist sind es Glykoproteide, die den Schleim bilden, doch kommen auch, wie z. B. im Schleim der Rindsgalle, Nukleoproteidschleimbildungen vor[331]. Wir sehen also, daß bei der Schleimmetamorphose der Ursprung des Schleimes immer im Eiweiß liegt, aber hier wissen wir auch, im Gegensatz zur Fettmetamorphose zweifellos, daß der Schleim in der Zelle selbst erst gebildet wird. Auch die Schleimmetamorphose kommt schon normalerweise im gesunden Körper vor, besonders in den Zellen der Schleimhäute des Respirations- und Darmtraktus sowie des Urogenitalsystems. Aber bei der Schleimbildung dieser Schleimzellen geht unter normalen Verhältnissen nie die ganze Zelle zugrunde, sondern es wird immer nur ein Teil ihres Protoplasmas in Schleim umgewandelt. Fast immer sind die Schleimzellen zylindrische Zellen, deren Basis den Kern beherbergt, deren oberes Ende die freie Schleimhautoberfläche begrenzt. Immer ist es das obere freie Ende des Zellkörpers, dessen Protoplasma sich dauernd und in verstärktem Maße bei besonderen äußeren Einwirkungen in Schleim umwandelt, indem es zu einer durchsichtigen Masse mit einzelnen darin liegenden Protoplasmakörnchen aufquillt, die sich dann ohne Grenze mit den Schleimmassen der benachbarten Schleimzellen zu einer zusammenhängenden Schleimdecke vereinigt. Der untere, den Kern beherbergende Teil des Zellkörpers bleibt dabei dauernd am Leben (Fig. 163) und schiebt nur immer neue Massen von schleimbildender Substanz oder „Mucigen“ nach oben nach, die in demselben Grade, wie sie nachrücken, wieder in Schleim verwandelt werden. Eine vollständige Umwandlung des ganzen Zellkörpers in Schleim unter Zugrundegehen der Zelle selbst kommt aber besonders häufig unter pathologischen Verhältnissen am menschlichen Körper vor. Es sind das die namentlich bei schweren Katarrhen auftretenden Schleimmetamorphosen der Epithelzellen, Leukocyten etc., bei denen die betreffenden Zellen zugrunde gehen unter Aufquellung und Umwandlung ihrer lebendigen Substanz in Schleim (Fig. 164). Um einen prinzipiell ganz anderen Vorgang scheint es sich bei den merkwürdigen Vorgängen der Verschleimung zu handeln, die bei gewissen wirbellosen Tieren schon seit längerer Zeit bekannt sind. Bei manchen Formen der zu den Echinodermen gehörigen Seegurken oder Holothurien, jenen plumpen Tierformen, deren gurkenähnlicher Körper von einer derben, braunen, lederartigen Haut bedeckt ist, sieht man die dicke Haut, die den ganzen Körper des Tieres sackartig umgibt, nach starken äußeren Insulten einer vollständigen Verschleimung verfallen. Legt man z. B. die im Mittelmeer lebende Holothuria Poli an die Luft, so beginnt die dicke, harte Lederhaut sich allmählich in einen fadenziehenden Schleim zu verflüssigen und ist nach einigen Stunden bereits vollständig erweicht. Wenn man ein herausgeschnittenes Stück der Lederhaut mit feinen Nadelstichen durchbohrt, kann man, wie SEMPER[332] berichtet, diese schleimige Verflüssigung noch schneller herbeiführen, denn um jeden Stich herum beginnt die Haut momentan unter Aufquellung schleimig zu zerfallen, so daß das ganze Stück schließlich in eine dickflüssige Masse verwandelt ist, die, wenn man sie berührt, seidenglänzende Fäden zieht. Manche Arten der Holothuriengattung Stichopus können in ganz kurzer Zeit ihre Haut in einen zähen Schleim verwandeln. Nach den Untersuchungen von LINDEMANN[333] sind es nun hier nicht die Zellen der Haut, die einer Schleimmetamorphose unterliegen, sondern es ist die von den Zellen produzierte Interzellularsubstanz, die eine schleimige Verflüssigung erleidet. Diese Interzellularsubstanz, die eine dem Knorpel nahestehende chemische Beschaffenheit zu haben scheint, hängt in ihrer Konsistenz ganz wesentlich von dem Turgeszenzgrade der in ihr liegenden Zellen ab. Schwache Reize können den Turgor der Zellen bedeutend erhöhen, indem sie bewirken, daß die Zellen reichlich Wasser aus der Interzellularsubstanz aufnehmen. Durch diese Wasserentziehung wird die Interzellularsubstanz hart wie Knorpel. Wirken auf die knorpelhart gewordene Haut starke Reize, welche das Leben der Zellen selbst vernichten, so tritt das Wasser aus den Zellen wieder in die Interzellularsubstanz, die nun durch reichliche Wasseraufnahme in kurzer Zeit bis zur schleimigen Verflüssigung aufquillt. Die chemische Natur der Interzellularsubstanz bedarf indessen noch einiger weiterer Aufklärung. Jedenfalls aber steht diese überaus merkwürdige Verschleimung der Holothurienhaut im ganzen Organismenreiche vereinzelt da.
Fig. 164.
Schleimig metamorphosierte Zellen
.
I
Leukocyten,
II
Flimmerzellen. Nach Z
IEGLER
.
Bei den Vorgängen der Amyloid-Metamorphose handelt es sich ebenfalls um die Bildung eines Glykoproteids. Die Amyloidsubstanz, diese wachsartig oder speckartig glänzende Substanz, die der betreffenden Erkrankung auch den Namen der wachsartigen oder speckartigen Degeneration eingetragen hat, wurde von VIRCHOW zuerst als Amyloidsubstanz bezeichnet, weil sie sich bei Jodfärbung ähnlich wie pflanzliches Amylum und Zellulose verhält, indem sie unter gewissen Bedingungen durch Jod blau gefärbt wird. Später hat man das Amyloid als einen Körper der Eiweißgruppe erkannt, denn es enthält Stickstoff und gibt gewisse Eiweißreaktionen, so daß man es zunächst in die Sammelgruppe der albuminoiden Stoffe einreihte, bis man in neuerer Zeit fand, daß es eine den Mucinoiden zugehörige Substanz ist, die eine Verbindung der im Knorpel vorkommenden Chondroitinschwefelsäure mit einem Eiweißkörper und einer Kohlehydratgruppe vorstellt. Wie KRAWKOW[334] gezeigt hat, findet sich Amyloidsubstanz in geringen Mengen schon in der normalen Arterienwand, das ist an der Stelle, von der aus auch die pathologische Amyloidmetamorphose der Organe ausgeht. Sehr charakteristisch ist das Verhalten der Amyloidsubstanz gegen die Anilinfarbe Methylviolett, unter deren Einwirkung sie eine schön rubinrote Färbung annimmt, während gesunde Gewebe nur blau gefärbt werden. Durch seine chemische Zusammensetzung deutet das Amyloid offen seinen Ursprung an. Es kann nur von den Eiweißkörpern der Zelle abstammen, und wir werden, obwohl bisher über die Entstehung des Amyloids nichts Näheres bekannt ist, doch nicht fehlgehen, wenn wir es als ein Proteid betrachten, das von der Zelle selbst gebildet und dann nach außen ausgeschieden und abgelagert wird. Das Amyloid scheint nämlich nie in der Zelle selbst zur Ablagerung zu gelangen, vielmehr finden wir es immer in den die Zellen verkittenden Bindesubstanzen, besonders in den Wandungen der kleinen Blutgefäße (Fig. 165). In demselben Maße aber, wie die Gefäßzellen der erkrankten Organe das Amyloid absondern, gehen sie selbst zugrunde, sei es, daß sie infolge der Stoffwechselstörung, deren Folge eben die Anhäufung des Amyloids ist, absterben, sei es, daß sie passiv durch die sich zu beträchtlichen Massen anhäufende Amyloidsubstanz auseinandergerissen, erdrückt, erstickt, getötet werden. Die Amyloidmetamorphose ist ein sekundäres Krankheitssymptom, das hauptsächlich im Anschluß an lange bestehende chronische Krankheiten, wie Tuberkulose, langwierige Eiterungen etc., in den Unterleibsorganen auftritt, vor allem in Milz, Leber, Nieren, Lymphdrüsen. Das weist darauf hin, daß es sehr allmählich sich entwickelnde und tiefgehende Ernährungsstörungen der Gewebe sind, welche die Zellen in den Zustand versetzen, in dem sie ihr Eiweiß allmählich in Amyloid umwandeln. In neuerer Zeit ist es DAVIDSOHN[335] und LUBARSCH[336] auch gelungen, eine Amyloidmetamorphose künstlich hervorzurufen durch Erzeugung von wochenlangen Eiterungen mit Hilfe von Terpentinölinjektionen.
Fig. 165.
Amyloide Degeneration der Leberkapillaren
. Die Zellen sind durch zwischen ihnen abgelagerte Amyloidmassen auseinandergedrängt. Nach Z
IEGLER
.
In den Vorgängen der Verkalkung endlich haben wir ebenfalls einen metamorphotischen Prozeß, der sich den letzteren beiden an die Seite stellt, denn, wie dort Schleim oder Amyloidsubstanz, so werden hier Kalksalze von den Zellen gebildet und entweder nach außen abgeschieden oder in der absterbenden Zellsubstanz selbst abgelagert. Für die erstere Form haben wir als Analogon im normalen Körper die Knochenbildung. Unsere großen Skelettknochen entstehen nämlich aus einer knorpeligen Grundlage dadurch, daß die Knorpelzellen in die Grundsubstanz hinein Kalksalze, vor allem phosphorsauren und kohlensauren Kalk, abscheiden, der sich in Krümchen immer mehr und mehr aneinanderdrängt, verkittet und so die feste Knochensubstanz liefert, in der die Knochenzellen als sogenannte Knochenkörperchen weiter leben. Dieser selbe Vorgang, der in der Entwicklung des Wirbeltierorganismus durchaus notwendig erscheint, tritt aber auch unter pathologischen Verhältnissen auf, besonders wenn im Greisenalter oder nach bestimmten Erkrankungen die Knorpelscheiben der Gelenke verknöchern. Es treten dann dieselben Vorgänge auf; nur gehen in der Regel die Zellen, von denen die Kalksalze ausgeschieden werden, später selbst zugrunde. Neben dieser „Verknöcherung“ kommt aber unter pathologischen Umständen auch eine wirkliche Verkalkung der Zellen selbst vor, wobei die Kalksalze innerhalb der absterbenden Zelle zur Ablagerung gelangen, bis zuletzt die lebendige Substanz völlig verschwunden ist, und ihre Stelle von einer zusammengekitteten Kalkmasse eingenommen wird. Das geschieht z. B. mit höherem Alter, bei dem einen früher, bei dem anderen später, in den Arterienwänden (Fig. 166 A), so daß dieselben brüchig werden und zu Blutergüssen Anlaß geben. Dadurch wird die „Arteriosklerose“ älteren Menschen äußerst gefährlich, denn wenn umfangreiche Blutungen in besonders wichtigen Organen eintreten, können Funktionen gelähmt werden, deren Ausfall den Tod mit sich bringt. Arteriosklerotische Blutungen im Gehirn sind die Grundlage dessen, was man als „Gehirnschlag“ oder „Apoplexie“ bezeichnet, Gefäßbrüche im Herzen führen den „Herzschlag“ herbei. Ferner verkalken bei gewissen Gehirnkrankheiten die Ganglienzellen des Gehirns, so daß man z. B. im Gehirn von Blödsinnigen „versteinerte“ Ganglienzellen im wahren Sinne des Wortes beobachten kann (Fig. 166 B).
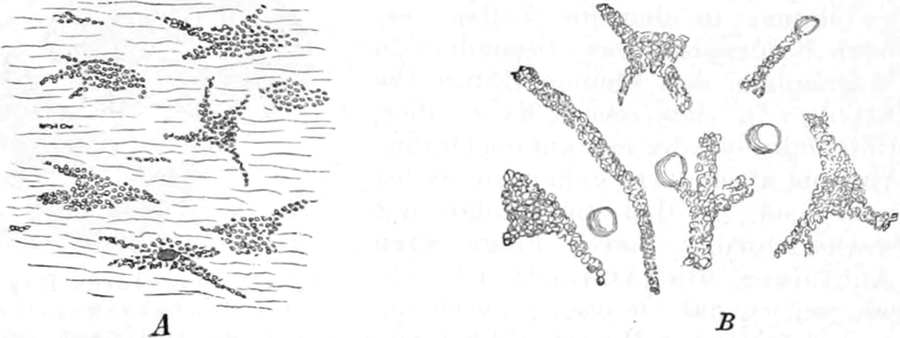
Fig. 166.
Verkalkung von Zellen
.
A
Verkalkte Zellen in der Wand eines Blutgefäßes.
B
Verkalkte Ganglienzellen aus dem Gehirn eines Blödsinnigen. Nach Z
IEGLER
.
Außer diesen hier angeführten Formen metamorphotischer Prozesse kennt die Pathologie noch eine Reihe anderer, wie die „Pigmentatrophie“, die „hyaline Degeneration“ etc., denen aber stets das gleiche Prinzip zugrunde liegt, daß der Stoffwechsel der Zellen eine perverse Richtung einschlägt, so daß sich Stoffe in der Zelle anhäufen, die normalerweise nicht zur Aufspeicherung kommen, bis schließlich die Zelle zugrunde geht. Allein, diese Stoffe und ihre Genese sind in den eben genannten Fällen zum Teil noch viel weniger bekannt als in den besprochenen metamorphotischen Prozessen, so daß es an dieser Stelle nicht nötig ist, näher darauf einzugehen.
Ueberhaupt bedürfen die metamorphotischen Prozesse, vor allem die Genese der dabei entstehenden Stoffe und die Störungen des normalen Stoffwechsels, auf denen sie beruhen, noch sehr der Aufklärung, die freilich erst in dem Maße zu erwarten ist, wie unsere Kenntnisse über den Stoffwechsel im allgemeinen sich erweitern werden.
B. Die Bedingungen des Todes.
So mannigfaltig wie die Vorgänge, unter denen sich der Tod entwickelt, sind auch die Faktoren, die seinen Eintritt bedingen. Einige der speziellen Todesbedingungen haben wir bereits hier und dort berührt; aber es ist unmöglich, die speziellen Bedingungen für jeden einzelnen Fall zu behandeln. Dagegen ist es notwendig, etwas genauer auf die allgemeinen Bedingungen des Todes einzugehen, weil sich daran die interessante Frage knüpft, ob der Tod überhaupt für alle lebendigen Organismen jene „dira necessitas“ ist, die er für den Menschen bildet, mit anderen Worten, ob es auch Organismen gibt, deren Körper unsterblich ist.
1. Aeußere und innere Todesbedingungen.
Wenn wir von der Tatsache ausgehen, daß Leben einerseits nur bestehen kann, anderseits aber auch bestehen muß, sobald ein bestimmter Komplex von Bedingungen erfüllt ist, dann sind die Todesbedingungen damit ebenfalls schon in ihrer allgemeinen Form bestimmt, denn dann muß der Tod eintreten, sobald die Lebensbedingungen wegfallen. Entsprechend unserer Unterscheidung von äußeren und inneren Lebensbedingungen müssen wir demnach auch zwischen äußeren und inneren Todesbedingungen unterscheiden, je nachdem der Tod durch den Wegfall der äußeren oder der inneren Lebensbedingungen herbeigeführt wird.
Wenn wir zunächst die äußeren Todesbedingungen ins Auge fassen, so bedarf es keiner eingehenderen Erörterung, daß Entziehung der Nahrungsstoffe, des Wassers, event. des Sauerstoffs, daß ferner Ueberschreitung der notwendigen Temperatur- und Druckgrenzen den Tod herbeiführt, abgesehen von den Organismen, die unter bestimmten Verhältnissen nur in den Zustand des Scheintodes übergehen. Allein, damit sind doch die äußeren Todesbedingungen noch nicht erschöpft. Die allgemeinen und speziellen Lebensbedingungen können erfüllt sein, und dennoch kann durch Einwirkung äußerer Faktoren der Tod herbeigeführt werden. Wir müssen also den Begriff der äußeren Lebensbedingungen noch ergänzen, indem wir dazu auch das Fernbleiben solcher Einflüsse rechnen, welche die lebendige Substanz zerstören. Derartige Einflüsse sind vor allem chemische und elektrische Einwirkungen.
Die chemischen Einflüsse, die tödliche Wirkungen hervorrufen, sind die Gifte, und ihre Zahl ist unermeßlich. Alle chemischen Stoffe, die in chemische Beziehung zu irgendwelchen wesentlichen Bestandteilen der lebendigen Substanz treten, so daß der Mechanismus des Stoffwechsels dadurch eine Störung erleidet, bedingen teils schon nach kürzester, teils erst nach andauernder Einwirkung den Tod, sei es, daß derselbe sehr schnell erfolgt, sei es, daß er erst das Ende langer nekrobiotischer Veränderungen vorstellt. Wirken z. B. irgendwelche Mineralsäuren oder Metallsalze auf die lebendige Substanz der Zelle ein, so geht die Zelle unfehlbar zugrunde, weil alles Eiweiß durch diese Stoffe gefällt oder chemisch gebunden wird, so daß der Stoffwechsel zum Stillstand kommt. Andere auf alle lebendige Substanz einwirkende Gifte sind die Anaesthetica (Chloroform, Aether, Alkohol etc.), deren Dämpfe bei dauernder Einwirkung ebenfalls alle Lebensäußerungen zum Stillstand bringen, mag es sich um Pflanzen, Tiere oder einzellige Wesen handeln[337]. Auf welcher Veränderung der lebendigen Substanz aber diese eigentümliche Wirkung der Anaesthetica beruht, darüber sind erst in allerjüngster Zeit einige theoretische Erörterungen angestellt worden, auf die weiter unten eingegangen werden soll. Noch viel weniger aber wissen wir von der Wirkungsart der meisten Gifte, die teils auf alle lebendige Substanz, teils nur auf ganz bestimmte Zellen wirken.
Wie die Gifte wirkt auch die Elektrizität in größerer Intensität dadurch schädlich auf die lebendige Substanz, daß sie chemische Veränderungen in derselben erzeugt. Es ist bekannt, daß man chemische Verbindungen, die sich in Lösung befinden, durch einen galvanischen Strom elektrolytisch zersetzen kann. Ebenso werden auch die Verbindungen der lebendigen Substanz durch starke galvanische Ströme zersetzt, so daß die lebendige Substanz getötet wird und zerfällt.
So liegen, wenn auch der speziellere Verlauf ihrer Folgen zum Teil noch wenig bekannt ist, die äußeren Todesbedingungen doch klar und deutlich vor uns.
Ganz anders ist es dagegen mit den inneren Todesbedingungen. Sie sind noch immer in tiefes Dunkel gehüllt. Ja, viele Forscher glauben, daß es gar keine inneren Todesbedingungen gäbe, die in den Eigenschaften der lebendigen Substanz selbst begründet sind, und erklären den Eintritt des Todes im Greisenalter bei Leuten, die niemals krank gewesen sind, durch die allmähliche Häufung unmerklich kleiner Störungen während des ganzen Lebens. Das ist in der Tat diejenige Lösung des Problems, der man am häufigsten begegnet. Aber sie ist doch sehr wenig zureichend. Schon JOHANNES MÜLLER[338] fühlte sich nicht davon befriedigt. Er sagt in dem Abschnitt seines Handbuches über die „Vergänglichkeit der organischen Körper“: „Die Frage, warum die organischen Körper vergehen, und warum die organische Kraft aus den produzierenden Teilen in die jungen, lebenden Produkte der organischen Körper übergeht und die alten produzierenden Teile vergehen, ist eine der schwierigsten der ganzen allgemeinen Physiologie, und wir sind nicht imstande, das letzte Rätsel zu lösen, sondern nur den Zusammenhang der Erscheinungen darzustellen. Es würde ungenügend sein, hierauf zu antworten, daß die anorganischen Einwirkungen das Leben allmählich aufreiben; denn dann müßte die organische Kraft vom Anfang eines Wesens schon abzunehmen anfangen. Es ist aber bekannt, daß die organische Kraft zur Zeit der Mannbarkeit noch in solcher Vollkommenheit besteht, daß sie sich in der Keimbildung multipliziert. Es muß also eine ganz andere und tieferliegende Ursache sein, welche den Tod der Individuen bedingt, während sie die Fortpflanzung der organischen Kraft von einem Individuum zum anderen und auf diesem Wege ihre Unvergänglichkeit sichert.“ Derartige Einwände lassen sich viele machen. Wäre die Ansicht, daß der Tod durch Summation der Wirkungen von äußeren Schädlichkeiten herbeigeführt wird, richtig, so sollte man z. B. auch erwarten, daß es einem Menschen, der sehr regelmäßig lebt und alle Schädlichkeiten möglichst vermeidet, gelingen müßte, ungeheuer viel älter zu werden als jemand, der unregelmäßig lebt und sich vielen Strapazen aussetzt. Allein, selbst wenn sich hier in manchen Fällen eine Differenz herausstellte, so wäre sie doch immer nur verschwindend, denn die ältesten Menschen sind nicht viel über 120 Jahre alt geworden, und das waren durchaus nicht immer Leute von besonders regelmäßigem Lebenswandel. Dazu kommt ein anderer Umstand. Bei allen Menschen ohne Ausnahme, mögen sie in ihrem Leben den größten oder den geringsten Schädlichkeiten ausgesetzt gewesen sein, mögen sie oft oder nie krank gewesen sein, mögen sie diese oder jene Krankheit gehabt haben, bei allen treten im Greisenalter dieselben Veränderungen ein, die in atrophischen Prozessen fast aller Organe bestehen. COHNHEIM[339] bahnt daher, besonders im Hinblick auf den letzteren Umstand, mit Recht eine andere Erklärung an, indem er sagt: „Gerade die Konstanz, mit der im Greisenalter, gleichgültig, ob viel oder wenig, und besonders welche pathologischen Vorgänge im Leben eines Individuums gespielt haben, an sämtlichen Organen des Körpers eine mehr oder weniger ausgesprochene Atrophie sich einstellt, spricht meines Erachtens ganz evident dafür, daß die Bedingungen der senilen Atrophie sozusagen physiologische sind.“ Auf denselben Standpunkt stellt sich auch SEDGWICK MINOT[340] in seinen Untersuchungen über das Wachstum und die Altersveränderungen. In der Tat, wenn man den Menschen nicht als etwas Fertiges, Unveränderliches betrachtet, wenn man vielmehr seine ganze Entwicklung ins Auge faßt, wie er, obwohl immer unter denselben äußeren Bedingungen lebend, sich auch nach der Geburt noch mehr und mehr verändert, wie schon im Kindesalter normalerweise manche Organe, wie die Thymusdrüse, atrophieren, obwohl nicht die geringsten Schädlichkeiten von außen auf sie einwirken, wie später bei allen Frauen noch in ihrem kräftigsten Lebensalter die Geschlechtsorgane sich zurückbilden etc. etc., dann wird man keinen Zweifel mehr hegen können, daß die senile Atrophie, die schließlich zum Tode aus Altersschwäche führt, nur das letzte Ende der langen Entwicklungsreihe ist, die der Mensch wie jedes Tier während seines individuellen Lebens durchlaufen muß. In Wirklichkeit gibt es keinen Stillstand im Leben des Organismus. Ebenso wie sich der erwachsene Organismus aus der kleinen Eizelle allmählich entwickelt, ohne daß seine äußeren Lebensbedingungen, wie das z. B. bei vielen im Wasser lebenden Tieren der Fall ist, sich auch nur im geringsten verändern, ebenso entwickelt er sich auch, wenn auch mit verschiedener Geschwindigkeit, allmählich weiter zum greisen und schließlich zum toten Organismus. Die Eizelle ist der Anfang, der sterbende Greis das natürliche Ende einer ununterbrochenen Entwicklung, deren innere Bedingungen in der eigentümlichen Zusammensetzung der lebendigen Substanz liegen, die bereits die Eizelle auf ihren Lebensweg mitbekommen hat. Es muß daher notwendigerweise an die Stelle der landläufigen Ansicht, daß der Tod durch die dauernde Summation äußerer Schädigungen bedingt sei, die Vorstellung gesetzt werden, daß die Bedingungen des sogenannten „natürlichen“ Todes im lebendigen Organismus selbst gelegen sind.
Die Notwendigkeit dieser Vorstellung wird aber noch deutlicher, wenn wir uns nicht bloß auf den Menschen beschränken, sondern wenn wir die Geschichte des Todes in der Organismenwelt vergleichend betrachten. Daß die Auffassung des Todes als Endglied der Entwicklungsreihe erst so spät hervortreten konnte, liegt vor allem an der Ansicht, daß der Mensch, wenn er erwachsen ist, seine Entwicklung vollendet habe und sich jahre- und jahrzehntelang in einem stationären Zustande befinde. Diese Ansicht ist aber durchaus falsch und wird nur durch den Umstand erweckt, daß die Entwicklung des erwachsenen Menschen so ungemein viel langsamer abläuft als die Entwicklung in seinen ersten Embryonal- und Jugendstadien. In Wirklichkeit aber hört die Entwicklung nie auf. Die Veränderungen sehen wir ja auch deutlich genug, wenn wir die Zustände des Erwachsenen innerhalb längerer Zwischenräume vergleichen. Wenn auch keine neuen Organe mehr gebildet werden, so ist doch immerhin der Dreißiger ein anderer Mensch als der Vierziger, der Vierziger ein anderer als der Fünfziger und Sechziger usf. Ein stationärer Zustand tritt nie ein, und wir wissen ja jetzt auch, daß die Zellteilungen, auf denen von der Teilung der Eizelle an alle Entwicklung beruht, auch beim Erwachsenen und selbst beim Greise noch stattfinden, nur immer langsamer und langsamer. Allein was beim Menschen schwerer zu erkennen ist, das zeigt uns ein Blick auf die Verhältnisse, wie sie z. B. bei den Insekten bestehen, ohne weiteres. Während beim Menschen die Lebenszeit des Erwachsenen gegenüber der Embryonalzeit eine außerordentlich lange ist, haben wir bei den meisten Insekten das umgekehrte Verhältnis. Viele Insekten sterben sehr bald nach der Begattung oder der Eiablage, und nur die nicht zur Begattung gekommenen Individuen leben bisweilen länger. Das beste Beispiel liefern die Eintagsfliegen. Hier leben die erwachsenen und „fertig“ ausgebildeten Insekten häufig nur wenige Stunden. Sie sterben unmittelbar nach der Eiablage. Diese Tatsachen beweisen am allerschlagendsten, daß es nicht die summierte Wirkung vieler äußerlicher Schädlichkeiten sein kann, welche den Tod herbeiführt, sondern daß die Bedingungen des Todes im Organismus selbst schon angelegt sind, und daß der Tod nur das natürliche Ende der Entwicklung vorstellt. Das Problem der Entwicklung und das Problem des Todes gehören also untrennbar zusammen, das letztere ist nur ein Teil des ersteren.