Fünftes Kapitel. Von den Reizen und ihren Wirkungen. (continued 3)
Reading edition
Ebenso wie der künstlich erzeugte Tetanus sind aber auch alle andauernden Kontraktionen, die wir unter Nerveneinfluß in unserem Körper ausführen, distinuierliche, aus lauter schnell aufeinanderfolgenden Einzelerregungen zusammengesetzte Dauerkontraktionen.
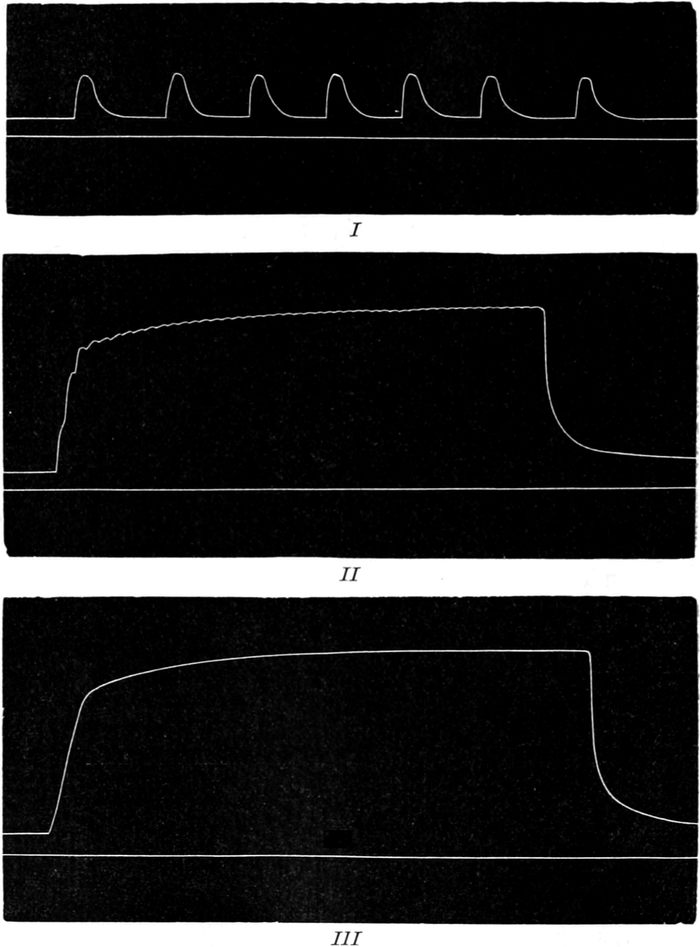
Fig. 226.
Myographische Kurven vom Gastrocnemius des Frosches
.
I
Einzelne Zuckungen, hervorgerufen durch einzelne Induktionsöffnungsschläge.
II
Unvollkommener Tetanus, hervorgerufen durch schneller aufeinanderfolgende Induktionsöffnungsschläge.
III
Vollkommener Tetanus, hervorgerufen durch sehr schnell aufeinanderfolgende Induktionsschläge.
Schließlich darf nicht unerwähnt bleiben, daß es Formen der lebendigen Substanz gibt, die überhaupt nicht durch Induktionsschläge, weder durch einzelne noch durch schnell oder langsam aufeinanderfolgende beeinflußt werden. Solche Objekte sind z. B. Orbitolites, Amphistegina und andere Meeresrhizopoden. Ihr Protoplasma verlangt eine längere Reizdauer, um zu reagieren, als sie der blitzartige Induktionsschlag besitzt[468].
Gehen wir noch kurz auf die anderen Erregungswirkungen der galvanischen Reizung ein, so finden wir, daß der galvanische Reiz nicht nur an den kontraktilen Substanzen mechanische Bewegungseffekte auslöst, sondern z. B. auch an solchen Organismen, die sich wie die Mimosa durch Turgeszenzveränderungen bewegen. Läßt man auf eine mit ausgespreizten Zweigen und Blättern dastehende Mimosa einzelne Induktionsschläge einwirken, so haben diese ganz dieselbe Wirkung wie etwa mechanische Reizung: die Pflanze senkt sofort ihre Zweige und klappt die Blätter zusammen in der typischen Form, die wir schon früher kennen lernten.
Auch die Produktion anderer Energieformen wird durch galvanische Reize ausgelöst. So haben thermoelektrische Messungen am Muskel ergeben, daß sich derselbe bei der Tätigkeit erwärmt, wenn auch nur in geringem Maße, und daß die Wärmeproduktion in einem ganz bestimmten Verhältnis zu der Arbeitsleistung steht. Ja, die Wärmeproduktion ist sogar stets größer als die Produktion von mechanischer Energie, denn von der Gesamtenergie, die der Muskel bei der Tätigkeit liefert, wird kaum ein Fünftel bis ein Drittel in Form von mechanischer Arbeit, alles andere dagegen als Wärme abgegeben.
Daß auch Elektrizitätsproduktion bei der durch galvanische Reizung bewirkten Muskelzuckung erfolgen kann, ist nach unseren früheren Erfahrungen bereits klar, da ja zwischen jeder kontrahierten Stelle und jeder ruhenden Stelle des Muskels eine elektrische Spannung entsteht, in der Weise, daß die kontrahierte Stelle sich zur ruhenden Stelle negativ verhält. Läuft also eine Kontraktionswelle über den ruhenden Muskel von einem Ende zum anderen, so kann man im Moment, wo dieselbe beginnt, von beiden Enden des Muskels einen „Aktionsstrom“ ableiten, da das andere Ende sich noch in Ruhe befindet, während das eine sich eben kontrahiert.
Schließlich wissen wir auch, daß durch elektrische Reizung bei pelagischen Leuchttieren, wie bei Radiolarien und Noktiluken, Lichtentwicklung erzeugt werden kann.
Daß aber alle diese Formen der Energieproduktion zugleich mit einer Erregung des Stoffwechsels verbunden sein müssen, ist nach unseren früheren Betrachtungen selbstverständlich, und hier ist es hauptsächlich der so viel untersuchte Muskel gewesen, der uns das direkt gezeigt hat. Der durch Reizung irgendwelcher Art zu dauernder Tätigkeit erregte Muskel verbraucht mehr Sauerstoff als der ruhende, er verbraucht das in ihm aufgespeicherte Glykogen, er produziert mehr Kohlensäure als der ruhende und außerdem Milchsäure und nimmt statt der neutralen oder alkalischen Reaktion des ruhenden Muskels eine saure Reaktion an. Alle diese Veränderungen zeigen aufs deutlichste, daß im Muskel, wenn er durch Reize in Tätigkeit versetzt wird, eine bedeutende Erregung des Stoffwechsels eintritt.
b) Lähmungswirkungen.
So vielfach und genau die Erregungswirkungen, die durch den galvanischen Strom erzeugt werden, bisher untersucht worden sind, so wenig klar sind bisher seine Lähmungswirkungen geworden. Dennoch sind auch im vorigen Abschnitt schon solche lähmende Wirkungen erwähnt worden. Die Erschlaffung, die am Muskel bei Schließung des Stromes an der Anode eintritt, und die Herabsetzung der Erregbarkeit, die unter den gleichen Bedingungen am Nerven zu beobachten ist, sind offenbar Lähmungsvorgänge, denn es ist in neuerer Zeit immer wahrscheinlicher geworden, daß sie in einer Herabsetzung der Dissimilationsprozesse bestehen. Es darf aber nicht unerwähnt bleiben, daß HERING, GASKELL, MELTZER und andere diese hemmenden Wirkungen wie alle Hemmungsprozesse nicht als Ausdruck einer dissimilatorischen Lähmung, sondern vielmehr als Folgen einer assimilatorischen Erregung auffassen. Indem durch die Wirkung des konstanten Stromes beim Muskel und Nerven an der Anode die Assimilationsprozesse gesteigert werden, überwiegt die Assimilationsphase des Stoffwechsels nach dieser Anschauung über die Dissimilationsphase und der Ausdruck davon ist die Expansion der vorher kontrahierten Muskelsubstanz resp. die Herabsetzung der Erregbarkeit und Leitfähigkeit des Nerven. Neuere Erfahrungen haben jedoch für andere Hemmungsvorgänge diese Auffassung als unzutreffend erwiesen und so ist es auch nicht wahrscheinlich, daß sie für diesen speziellen Fall richtig ist. Indessen soll auf diese Dinge erst weiter unten bei Erörterung der sogenannten Hemmungsvorgänge näher eingegangen werden. Andere Lähmungswirkungen des Stromes sind von ENGELMANN[469] und KRAFT[470] an der Flimmerbewegung beschrieben worden.
Die Kiemenleisten der zweiklappigen Muscheln sind mit einem Flimmerepithel bekleidet, dessen Wimpern sich durch ihre Länge besonders gut zur Beobachtung der Flimmerbewegung eignen. Reizte ENGELMANN diese Flimmerleisten mittels eines einzelnen stärkeren Induktionsschlages, so verfielen die Wimpern in Starre, genau so, wie nach stärkerer thermischer Reizung die Wimpern der Infusorien und Flimmerepithelien in Wärmestarre verfallen. Sie krümmten sich in der Schlagrichtung hakenförmig um, stellten ihre Bewegung ein und verharrten in dieser Stellung um so länger, je stärker der Induktionsschlag gewesen war.
Eine analoge Beobachtung machte KRAFT bei länger dauernder Einwirkung des konstanten Stromes auf die Flimmerepithelien der Wirbeltiere. Hier trat im Beginn der Einwirkung zunächst an den beiden Polen, dann aber durch Fortleitung der Erregung im Gewebe auch in der ganzen intrapolaren Strecke eine Beschleunigung des Wimperschlages ein, die aber bei längerer Dauer des Stromes allmählich abnahm und einer Herabsetzung der Wimpertätigkeit bis zum völligen Stillstand in der ganzen intrapolaren Strecke Platz machte. Wir haben hier also, wie es scheint, dasselbe Verhältnis wie auch bei zahlreichen anderen Lähmungen, daß der betreffende Reiz zunächst Erregung und dann bei stärkerer oder längerer Einwirkung Lähmung hervorruft. Dieses Verhältnis zwischen Erregung und Lähmung wird uns weiterhin noch eingehender zu beschäftigen haben.
Schließlich ist in neuerer Zeit wiederholt die Frage aufgeworfen worden, welche spezielle Eigenschaft des galvanischen Stromes die physiologischen Reizwirkungen an der lebendigen Substanz erzeuge. Es sind hier offenbar verschiedene Möglichkeiten denkbar. Die nächstliegende ist und bleibt immer die Annahme, daß es die elektrolytischen Prozesse in der lebendigen Substanz selbst sind, welche die verschiedenen Reizwirkungen hervorrufen. Es ist völlig zweifellos, daß der galvanische Strom in der lebendigen Substanz chemische Umsetzungen herbeiführt. Vor allem werden davon die sehr labilen Verbindungen betroffen werden, die wir, wie sich weiter unten zeigen wird, in der lebendigen Substanz als wesentliche Bestandteile annehmen müssen. Mit dem Zerfall dieser Verbindungen ist schon an sich die Entstehung von Erregungswirkungen verknüpft. Sodann aber ist von LOEB[471] auch die Hypothese gemacht worden, daß die polare Erregung bei Objekten, die in einem flüssigen Medium sich befinden, dadurch bedingt sei, daß durch die an den Grenzflächen der lebendigen Substanz und des Mediums im letzteren stattfindende Elektrolyse Stoffe entständen, die nun ihrerseits als chemische Reize auf die lebendige Substanz einwirken. Nach dieser Auffassung wären die Wirkungen des elektrischen Stromes als chemische Reizwirkungen zu betrachten. Allein schon PÜTTER[472] hat diese Hypothese von LOEB direkt durch Experimente widerlegen können und COEHN und BARRATT[473] haben aus physikalisch-chemischen Gründen ihre Unhaltbarkeit nachgewiesen. Endlich hat man auch die durch den galvanischen Strom hervorgerufene Flüssigkeitsverschiebung in porösen mit Flüssigkeit getränkten Körpern als ein Moment geltend gemacht, das vielleicht eine Komponente in dem Komplex der Reizwirkungen bei galvanischer Reizung vorstellen könnte. CARLGREN[474] hat vor einiger Zeit gezeigt, daß in der Tat auch bei abgetöteten Zellen verschiedener Art durch starke Ströme Wirkungen erzielt werden können, die mit gewissen Reizwirkungen äußerlich sehr große Analogien aufweisen, die aber doch lediglich auf Flüssigkeitsverschiebungen zurückgeführt werden müssen. Es wird eine Aufgabe der künftigen Forschung sein, festzustellen, ob und inwieweit jeder einzelne dieser Faktoren an den Reizwirkungen beteiligt ist, die wir als Folgen der galvanischen Durchströmung an den verschiedenen Formen der lebendigen Substanz beobachten. Vorläufig können wir noch nicht spezialisieren in dieser Richtung. Vorläufig bleibt uns nichts anderes übrig, als die geschilderten Reizwirkungen wie bisher als Wirkungen der „galvanischen Reizung“ schlechthin zu bezeichnen, ohne Rücksicht auf die speziellere Frage, welche Momente im galvanischen Strom an ihrer Entstehung mitwirken.
B. Die bewegungsrichtenden Wirkungen einseitiger Reizung.
Unter den physikalischen Unterhaltungen, die uns in den Kulturländern schon in früher Kindheit geboten werden, pflegt die Beschäftigung mit den Wirkungen des Magnetismus eine große Anziehungskraft auf den kindlichen Geist auszuüben. Die merkwürdige Tatsache, daß sich die freischwingende Magnetnadel unter allen Umständen immer wieder mit ihrem einen Ende nach dem Nordpol der Erde einstellt, daß die mit einem Eisenstift versehenen Schiffchen und Tierchen, die das Kind im Wasserbecken schwimmen läßt, wie von einem Zauber gebannt den feinsten Bewegungen des Magnetstabes mit unfehlbarer Sicherheit folgen, daß die auf Papier gestreuten Eisenfeilspäne sich über einem darunter befindlichen Magneten in ganz charakteristischen Kurven anordnen — alles das hat uns als Kinder im höchsten Grade gefesselt. Auch auf die glühende Phantasie der Völker des Orients, die sich in vieler Beziehung noch jetzt kindliche Züge erhalten haben, mußten die Wirkungen des Magneten den gleichen tiefen Eindruck machen. Unter den phantasievollen Märchen der berückenden SCHEHERAZADE haben wir dafür in den unheimlichen Erzählungen vom Magnetberg, dem Schrecken der Seefahrer, die ihr Schiff, von der unsichtbaren Gewalt angezogen, unrettbar an dem glatten Erzfelsen zerschellen sehen, einen sprechenden Ausdruck, der das Kinderherz noch immer mächtig ergreift.
Dem Erwachsenen ist durch Gewöhnung an die eigentümlichen Wirkungen des Magneten der Sinn für das Wunderbare und Fesselnde derselben meist abhanden gekommen, aber die alten Empfindungen unserer Kindheit werden wieder wach, wenn wir die analogen Wirkungen, wie sie der Magnet auf die Magnetnadel ausübt, die Anziehung und Abstoßung, als Wirkungen der verschiedensten Reize in die lebendige Natur übersetzt finden, wenn wir sehen, daß die Reize eine Wirkung auf die Organismen auszuüben imstande sind, die sie unter Umständen mit derselben unwiderstehlichen Gewalt und der gleichen unfehlbaren Sicherheit, wie der Magnetismus das Eisen, zwingt, sich der Reizquelle zu- oder sich von ihr abzuwenden.
Die Motte fliegt mit tödlicher Sicherheit immer wieder dem Lichte zu, und obwohl sie sich bereits unzählige Male ihre Flügel gesengt hat, kann sie dem faszinierenden Reiz des Lichtes nicht widerstehen, bis sie tot in die Flamme fällt. Da aber bei den höheren Tieren infolge der Mitwirkung des Nervensystems diese Reizwirkungen eine Komplikation erfahren, die ihre Uebersichtlichkeit ganz bedeutend erschwert, so werden wir auch diese Reizwirkungen zweckmäßigerweise vorwiegend an einfacheren Organismen betrachten, und zwar möglichst an der einzelnen Zelle.
Seit den ersten grundlegenden Beobachtungen und Experimenten über diese eigentümlichen Reizwirkungen von PFEFFER, STAHL, ENGELMANN, STRASBURGER und anderen ist eine ganz unübersehbare Literatur über diesen Gegenstand erschienen. Unzählige spezielle Beispiele aus dem Gebiete der verschiedenen Reizqualitäten tauchen von Jahr zu Jahr neu auf in der wissenschaftlichen Literatur, so daß es heute nicht im entferntesten mehr möglich ist, die Gesamtheit aller Einzelbeispiele aufzuführen, wie es noch vor 20 Jahren[475] geschehen konnte. Dagegen ist neuerdings eine vorzügliche zusammenfassende Darstellung auf diesem Gebiete erschienen von JENNINGS[476], die auf einer Fülle von wichtigen eigenen Beobachtungen und Experimenten basiert ist.
Was zum Zustandekommen dieser interessanten und biologisch so ungemein wichtigen Reizwirkungen unumgänglich notwendig ist, das ist die Bedingung, daß Differenzen in der Reizung an verschiedenen Körperstellen bestehen. Wirken die Reize allseitig gleich stark ein, so beobachten wir zwar alle im vorhergehenden Abschnitt geschilderten Reizwirkungen, aber eine bewegungsrichtende Wirkung kann nicht zustande kommen. Nur eine ungleich von verschiedenen Seiten her einwirkende Reizung kann die Bewegungsrichtung beherrschen.
1. Chemotaxis[477].
Unter „Chemotaxis“ verstehen wir die Tatsache, daß Organismen, die mit aktiver Bewegungsfähigkeit begabt sind, sich unter dem Einfluß einseitig einwirkender chemischer Reize entweder zu der Reizquelle hin- oder von der Reizquelle fortbewegen. Im ersteren Falle, in dem eine Annäherung an die Reizquelle stattfindet, sprechen wir von einer positiven, im letzteren Falle, in dem eine Entfernung von der Reizquelle erfolgt, von einer negativen Chemotaxis. Eine einseitige Reizung ist aber bei chemischen Reizen nur da realisiert, wo die Konzentration des betreffenden Stoffes vom lebendigen Objekt her nach einer Richtung hin allmählich steigt.
Von ENGELMANN zuerst an Bakterien entdeckt, von STAHL bei Myxomyceten beobachtet, von PFEFFER in größerer Ausdehnung methodisch studiert und in neuerer Zeit von MASSART, LEBER, GABRITSCHEVSKY, METSCHNIKOFF und anderen bei Leukocyten verfolgt, ist die Chemotaxis jetzt als eine Reizwirkung von ungemeiner Verbreitung unter den verschiedensten Zellen und von außerordentlicher Bedeutung nicht bloß für die einzelligen Organismen, sondern auch für das Leben im Zellenstaate erkannt worden.
Unter den nackten Protoplasmamassen wurden die chemotaktischen Reizwirkungen zuerst von STAHL[478] an den Myxomyceten beobachtet. Die gelben, netzförmig sich ausbreitenden Plasmodien des in der Gerberlohe lebenden Aethalium septicum ließ STAHL auf feuchte Fließpapierstreifen kriechen und hängte dann einen solchen Streifen mit dem einen Ende in sauerstofffrei gemachtes Wasser, das durch eine Oelschicht, die sich völlig indifferent verhielt, von dem Sauerstoff der Luft abgegrenzt war, während das andere Ende des Plasmodiums mit der Luft in Berührung stand. Die Folge war die, daß das Protoplasma der in das Wasser tauchenden Stränge allmählich ganz aus dem Wasser herausströmte und sich oberhalb der Oelschicht auf dem nassen Fließpapier an der Luft ansammelte. Es war also nach dem Sauerstoff der Luft positiv chemotaktisch. Daß es nicht das Wasser selbst war, was die Plasmodien forttrieb, wie man etwa vermuten könnte, geht aus der Tatsache hervor, daß die Plasmodien sogar positiv chemotaktisch nach Wasser sind, und vom Trockenen her immer ins Feuchte kriechen, so daß man sogar von einer besonderen „Hydrotaxis“ gesprochen hat. Man muß daher die Fließpapierstreifen zu dem Versuch auch stets feucht erhalten, damit nicht die Chemotaxis nach Wasser mit der Chemotaxis nach Sauerstoff interferiert. Auch anderen Stoffen gegenüber verhielten sich die Plasmodien positiv chemotaktisch, vor allem gegenüber der ihnen zur Nahrung dienenden Lohe. So krochen in den Versuchen STAHLs die Protoplasmamassen stets nach Lohestückchen oder nach Papierkugeln, die mit einem Loheaufguß getränkt waren, hin und häuften sich hier an, eine Form der positiven Chemotaxis, die STAHL als „Trophotaxis“ bezeichnet hat, weil sie, zur Aufsuchung der Nahrung unter den einzelligen Organismen weit verbreitet, eine wichtige Rolle spielt. LEBER[479], MASSART[480], METSCHNIKOFF[481], BUCHNER[482] und andere haben dann auch an den Leukocyten der Wirbeltiere chemotaktische Eigenschaften festgestellt, und zwar hat sich hier ein Verhältnis gefunden, das für die Stellungnahme des Organismus gegenüber den Infektionskrankheiten von allergrößter Bedeutung ist. Wie wir an anderer Stelle[483] bereits sahen, scheiden die Bakterien gewisse Stoffwechselprodukte aus, die in neuerer Zeit vielfach die Aufmerksamkeit der Forscher auf sich gelenkt haben. Diese Stoffwechselprodukte der Bakterien üben eine ganz hervorragende chemotaktische Wirkung auf die Leukocyten aus und veranlassen sie, in großen Scharen nach derjenigen Stelle im Organismus aus der ganzen Nachbarschaft hinzukriechen, wo eine Einwanderung und Vermehrung von Bakterien stattgefunden hat. So findet an dem Herde der Infektion eine dichte Anhäufung von Leukocyten statt, die in gewissen Fällen, wie METSCHNIKOFF gezeigt hat, die Bakterien auffressen und den weiteren Verlauf der Infektion zum Teil bestimmen. Ist die Einwanderung und Vermehrung der Bakterien nicht zu stark, so können sie im Kampf mit den Leukocyten, die gewissermaßen die Polizei des Körpers gegenüber den unbefugten Eindringlingen repräsentieren, unterliegen, und die Infektion wird coupiert. Erweisen sich die Bakterien als die Stärkeren, so findet eine Ausbreitung der Infektion und eine allgemeine Erkrankung des Organismus statt, deren Verlauf dann durch andere Momente bestimmt wird.
Um uns von der positiv chemotaktischen Wirkung der Bakterienprodukte auf die Leukocyten zu überzeugen, können wir mit MASSART folgenden Versuch anstellen. Nach einer von PFEFFER zuerst ersonnenen Methode füllen wir ein kurzes Kapillarröhrchen mit einer Kultur des eitererregenden Staphylococcus pyogenes albus oder aureus und schmelzen das eine Ende des Röhrchens zu. Darauf legen wir das Röhrchen in die Bauchhöhle oder unter die Haut eines Kaninchens und lassen es etwa 10–12 Stunden liegen. Nach Ablauf dieser Zeit finden wir bei der mikroskopischen Betrachtung des Röhrchens, daß von der offenen Seite her ein dichter Schwarm von Leukocyten in das Innere eingedrungen ist, der wie ein dicker weißer Pfropfen die Oeffnung verschließt (Fig. 227). Die Leukocyten sind also, durch die Bakterienstoffe veranlaßt, aus den Geweben der Tiere in die Kapillarröhre hineingekrochen. Ein gewissenhafter Forscher muß indessen sofort den Einwand machen, daß es vielleicht die Nährlösung, in der die Bakterien kultiviert werden, sei, die chemotaktisch auf die Leukocyten wirke. Aber dieser Einwand läßt sich widerlegen, wenn wir, wie das MASSART getan hat, zur Kontrolle ein gleiches Kapillarröhrchen, mit derselben Nährflüssigkeit, aber ohne Bakterienkultur in das Tier hineinbringen. Die Einwanderung der Leukocyten bleibt in diesem Falle aus. Auch daß es nicht bloß die Bakterienkörper selbst, sondern die von ihnen abgeschiedenen Stoffwechselprodukte sind, welche die chemotaktische Wirkung hervorrufen, läßt sich beweisen, indem wir eine sterile und von Bakterienleibern vollständig befreite Kulturflüssigkeit zum Versuch verwenden, in der sich also nur die gelösten Stoffwechselprodukte der betreffenden Bakterien befinden. Der Erfolg ist dann der gleiche, wie wenn die Kultur direkt zum Versuch benutzt wäre: das Röhrchen hat sich nach einiger Zeit mit eingewanderten Leukocyten gefüllt. Was aber von den Kulturen des Staphylococcus pyogenes albus oder aureus gilt, das hat man auch bei vielen anderen pathogenen Bakterienformen gefunden, und es ist zweifellos, daß weiter fortgesetzte Untersuchungen über die Beziehungen zwischen Leukocyten und Bakterien noch Klarheit über eine ganze Reihe von Punkten verbreiten werden, die bisher in der Geschichte der Infektionskrankheiten in tiefes Dunkel gehüllt gewesen sind.
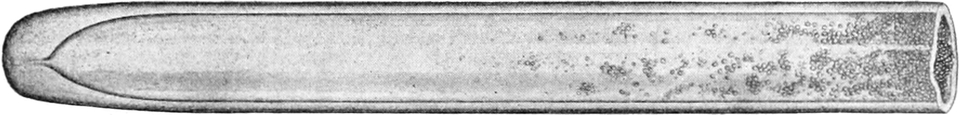
Fig. 227.
Chemotaxis von Leukocyten nach Eiterkokken
. Die Leukocyten sind in die Kapillarröhre, welche die Kultur von Staphylokokken enthält, in dichten Scharen eingewandert, wie besonders an der Oeffnung der Röhre zu sehen ist.
Uebrigens zeigen sich die Leukocyten nicht bloß chemotaktisch gegenüber den Stoffwechselprodukten der Bakterien, sondern, wie BUCHNER gefunden hat, auch gegenüber den Eiweißkörpern der Bakterienleiber selbst und gegenüber einer ganzen Reihe von Stoffen nicht bakterieller Abkunft. So fand BUCHNER, daß Weizenmehl- und Erbsenmehlbrei besonders stark positiv chemotaktisch wirksam sind. Schließlich hat SICHERER[484] gezeigt, daß die Leukocyten von Warmblütern unter geeigneten Bedingungen auch außerhalb des Tierkörpers ihre chemotaktischen Eigenschaften gegen die verschiedensten Stoffe noch lange Zeit ebenso deutlich äußern wie im lebendigen Tierkörper selbst.
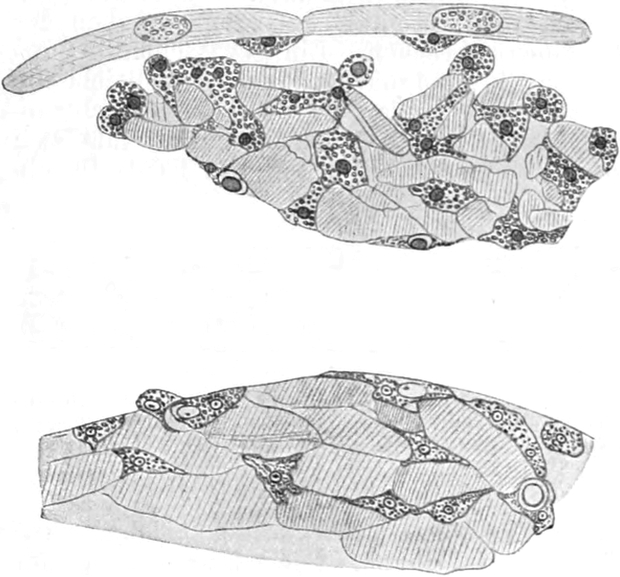
Fig. 228.
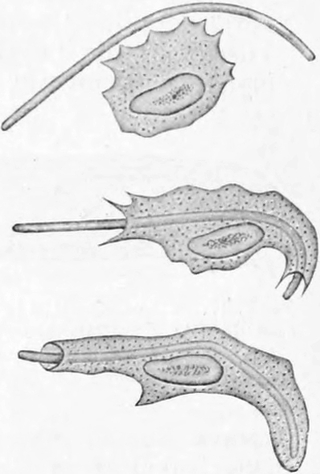
Fig. 229.
Fig. 228. Leukocyten bei der Metamorphose der Fliegenmaden die Muskeln zerstörend. Die gekörnten Massen sind Leukocyten, die gestreiften sind Muskelbruchstücke. Nach KOWALEVSKY.
Fig. 229. Leukocyt, ein Milzbrandbakterium fressend. Nach METSCHNIKOFF.
Eine wichtige Rolle spielt die Chemotaxis der Leukocyten ferner in der Entwicklung vieler Tiere. Das geht besonders aus den schönen Untersuchungen KOWALEVSKYs[485] an Insekten hervor. Wenn sich die Fliegenmade in die fertige Fliege umwandelt, eine Metamorphose, die ziemlich schnell erfolgt, werden die alten Organe des Madenkörpers, wie die Kriechmuskeln etc., überflüssig und beginnen zu degenerieren. Die mit Beginn dieser Degeneration auftretenden Stoffe wirken aber in hohem Grade chemotaktisch auf die Leukocyten, die in großen Scharen in die degenerierenden Organe einwandern, um als echte Phagocyten die zerfallenden Massen aufzufressen und so die Beseitigung derselben beschleunigen zu helfen (Fig. 228). Es ist charakteristisch, daß die Phagocyten nur bei solchen Insekten, bei denen die Metamorphose sehr schnell erfolgt, diese Tätigkeit entfalten, daß sie dagegen bei anderen Insekten, wie bei der Motte etc., und ferner bei der Degeneration des Kaulquappenschwanzes etc. nicht beteiligt sind. Dagegen konnte METSCHNIKOFF die analogen Vorgänge wieder in der Entwicklung der Seesterne nachweisen.
Weit verbreitet ist die Chemotaxis bei den geißeltragenden Bakterien, Infusorien und Schwärmsporen. An Bakterien wurde sie von ENGELMANN[486] zuerst entdeckt und auch gleich in genialer Weise praktisch verwendet. ENGELMANN beobachtete nämlich, daß gewisse Bakterienformen, die in faulenden Aufgüssen leben, sich in großen Massen in der Nähe von Sauerstoffquellen ansammeln. So findet unter dem Mikroskop im offenen Tropfen eine dichte Ansammlung dieser Mikroben an den Tropfenrändern statt, wo der Sauerstoff der Luft den nächsten Zutritt hat. Unter dem Deckglas sammeln sich die Bakterien ebenfalls in der Nähe des Deckglasrandes an und bilden einen dichten, parallel dem Deckglasrande hinziehenden Wall. Auch Luftbläschen, die sich unter dem Deckglas befinden, sowie Pflanzenzellen, deren Chlorophyll im Lichte Sauerstoff abspaltet, wirken in derselben Weise, namentlich wenn man durch Abschluß der Deckglasränder mit einer Oelschicht eine gewisse Sauerstoffnot unter dem Deckglas erzeugt hat. ENGELMANN hat diese überaus große Erregbarkeit der Bakterien durch Sauerstoff benutzt, um darauf eine Methode zum mikroskopischen Nachweis kleinster Sauerstoffmengen zu gründen, die für die Erkenntnis der assimilatorischen Wirkung verschiedener Lichtarten in der grünen Pflanzenzelle von maßgebender Bedeutung geworden ist. In der Tat erkennt man bei äußerem Luftabschluß in einem bakterienhaltigen Tropfen die Stellen, an denen auch nur die geringsten Spuren von Sauerstoff vorhanden sind, sofort an der dichten Anhäufung dieser Mikroben. Ein schönes Beispiel dafür liefert folgende Beobachtung[487]. In einem Tropfen unter einem Deckglas befand sich im Gesichtsfelde eine große Diatomee (Pinnularia), die, da sie im Lichte durch ihre Chromophylltätigkeit Sauerstoff abschied, dicht mit einem Wall von bewegungslos daliegenden Spirochäten umgeben war. Im übrigen Teil des Gesichtsfeldes waren fast keine Spirochäten sichtbar. Da fing plötzlich die Diatomee an, eine Strecke weiterzugleiten, bis sie wiederum ganz still liegen blieb. Die Bakterien, auf diese Weise von ihrer Sauerstoffquelle im Stich gelassen, lagen zunächst noch einige Augenblicke ruhig. Alsbald aber trat eine lebhafte Bewegung unter ihnen ein, und in dichten Scharen schwammen sie wieder zu der Diatomee hinüber. In ein bis zwei Minuten waren fast alle wieder um dieselbe versammelt und umgaben sie wie bisher bewegungslos in dichtem Haufen (Fig. 230 I). Aehnliche Beobachtungen hat auch ENGELMANN abgebildet (Fig. 230 II u. III).
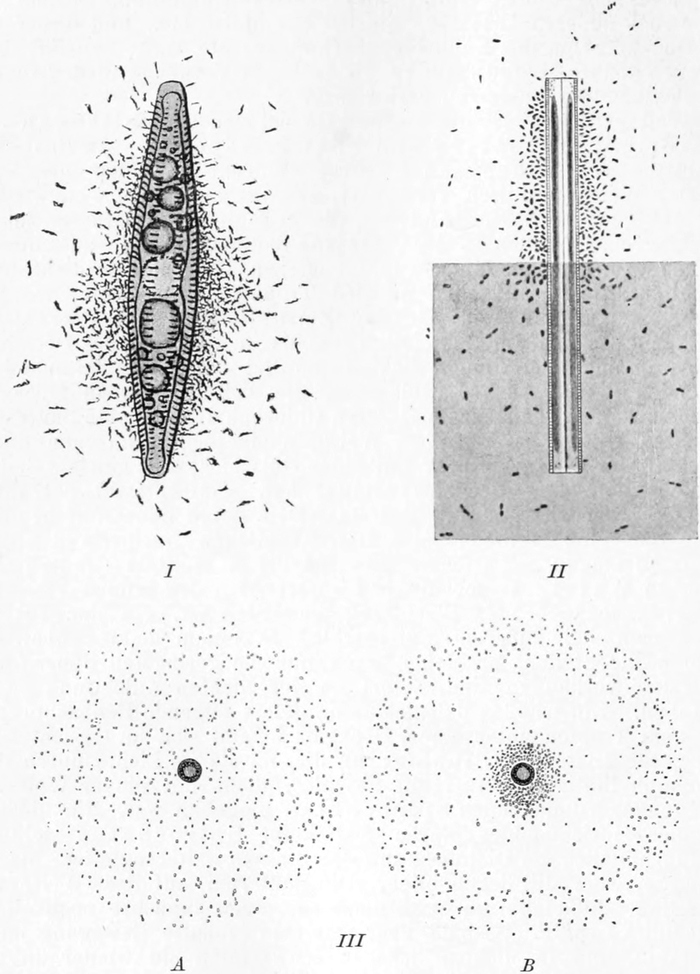
Fig. 230.
Chemotaxis von Bakterien nach Sauerstoff, der von Algenzellen im Lichte entwickelt wird
.
I
Diatomee im Sonnenlicht Sauerstoff entwickelnd und von Spirillen umschwärmt.
II
Diatomee zur Hälfte beschattet, zur Hälfte beleuchtet. Die Bakterien haben sich in der beleuchteten Hälfte gesammelt, wo der Sauerstoff entwickelt wird.
III
Algenzelle von Bakterien umschwärmt,
A
im Dunkel,
B
im Hellen.
II
und
III
nach E
NGELMANN
.
Die ausgezeichneten und methodischen Untersuchungen PFEFFERs[488] über die Chemotaxis hatten ihren Ausgangspunkt in Beobachtungen an den Spermatozoen von Farnen, bei denen sich chemotaktische Beziehungen zu der Eizelle herausstellten, die, wie man jetzt weiß, fast in der ganzen Organismenwelt Analoga finden und für die Befruchtung der Eizelle durch das Spermatozoon bei Tieren wie bei Pflanzen als ungemein wichtige Bedingung fungieren. Das Spermatozoon sucht die Eizelle auf und wird auf den richtigen Weg geführt fast überall in der lebendigen Welt durch die positiv chemotaktische Wirkung, welche die Stoffwechselprodukte der Eizelle auf die freibeweglichen Spermatozoenzellen ausüben. Daß unter den unzähligen Scharen von Spermatozoen der verschiedensten Tiere, die an manchen Stellen das Meer bevölkern, jede Art die richtige, zu ihr gehörige Eizelle findet, eine Tatsache, die sonst so überaus wunderbar wäre, ist in der überwiegenden Mehrzahl der Fälle eine unmittelbare Folge der Chemotaxis, und erklärt sich sehr einfach dadurch, daß jede Spermatozoenart chemotaktisch ist nach den spezifischen Stoffen, welche die Eizelle der betreffenden Art charakterisieren. Bei den Säugetieren wirkt auch die Uterusschleimhaut durch ihre Sekrete positiv chemotaktisch auf die Spermatozoen, wie LOEW[489] jüngst durch Versuche an Ratten, Kaninchen und Hunden nachwies, indem er unter dem Mikroskop einmal Stückchen der Uterusschleimhaut, das andere Mal Stückchen von anderen Geweben, wie Bindegewebe, Leber, Muskeln etc., mit spermatozoenhaltiger Flüssigkeit zusammenbrachte. Erstere war stark positiv chemotaktisch, letztere gar nicht oder, wie z. B. alkalische Darmschleimhaut, nur sehr schwach wirksam. Wir haben hier Anpassungen der einfachsten Art vor uns, die uns von neuem eine Vorstellung geben, wie ganz außerordentlich tief die Chemotaxis in alle Verhältnisse des Lebens hineingreift.
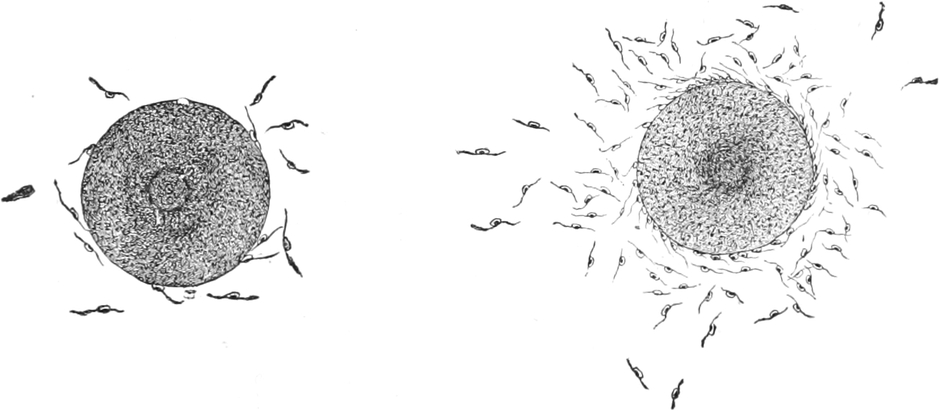
Fig. 231.
Zwei pflanzliche Eizellen, umschwärmt von Spermatozoen
. Nach S
TRASBURGER
.
Der Versuch PFEFFERs an den Spermatozoen der Farnkräuter war folgender. PFEFFER füllte ein einseitig zugeschmolzenes Kapillarröhrchen mit einer Lösung von ca. 0,05-proz. Apfelsäure und legte es in einen Tropfen, der eine größere Menge von Farnspermatozoen enthielt, so daß die Apfelsäure aus der Mündung der Kapillare allmählich in den Tropfen hinaus diffundieren mußte und dadurch eine einseitig wirkende Reizquelle abgab. Bei der mikroskopischen Beobachtung zeigte sich, daß die Spermatozoen sofort anfingen, auf die Mündung der Kapillare loszusteuern und in dieselbe hineinzuschwimmen. Nach ½ Minute waren bereits gegen 60 und nach 5 Minuten bisweilen etwa 600 Spermatozoen in die Kapillare hineingewandert. Nach 12 Minuten waren in einem Versuch von 24 Spermatozoen alle bis auf eins, das sich außerhalb zur Ruhe gelegt hatte, in der Kapillare versammelt. Die Apfelsäure wirkt also im höchsten Grade positiv chemotaktisch auf die Spermatozoen der Farne, die sich dagegen allen anderen Stoffen gegenüber, die PFEFFER noch auf ihre chemotaktische Wirksamkeit prüfte, völlig indifferent verhielten. Das legte die Vermutung nahe, daß es auch in dem die Eizelle bergenden Archegonium Apfelsäure sei, welche die Spermatozoen zur Annäherung und Einwanderung veranlaßte. Nun konnte zwar PFEFFER wegen der Kleinheit der Objekte und des Mangels mikroskopischer Reaktionsmethoden die Apfelsäure im Inhalt der Archegonien selbst nicht nachweisen; dafür gelang es ihm aber auf makrochemischem Wege, in den ganzen die Geschlechtsprodukte tragenden Pflanzenteilen die Anwesenheit von Apfelsäure festzustellen, so daß die Vermutung, es sei die Apfelsäure, die auch im Archegonium die Einwanderung der Spermatozoen veranlaßt, eine an Gewißheit grenzende Wahrscheinlichkeit gewinnt. Die Spermatozoen der Laubmoose verhielten sich gleichgültig gegen Apfelsäure, dagegen waren sie in ausgezeichnetem Grade chemotaktisch nach schwachen Rohrzuckerlösungen.
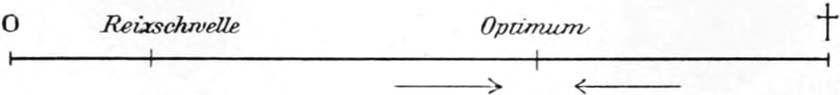
Fig. 232.
Schema der chemotaktischen Reizwirkung
. Die Konzentration nimmt von links nach rechts zu; bei
O
Nullpunkt der Konzentration, bei † Tötungspunkt. Die Pfeile geben die Bewegungsrichtung an.
PFEFFER dehnte später seine Untersuchungen auf eine große Zahl von Bakterien und Geißelinfusorien aus und gelangte dabei zu einer Reihe von Ergebnissen, die im höchsten Grade interessant sind. Es zeigte sich bei diesen Untersuchungen, daß die verschiedensten Stoffe in ganz verschiedener Weise auf die verschiedenen Mikroorganismenformen wirken. Stoffe, auf welche die einen reagierten, erwiesen sich für andere als unwirksam. Manche Stoffe wirkten nur positiv, andere nur negativ chemotaktisch. Im letzteren Falle entfernten sich die betreffenden Organismen von der Reizquelle, und die Kapillare blieb leer. Die Reizschwelle, d. h. derjenige Konzentrationsgrad, bei dem die chemotaktisch wirksamen Stoffe eben ihre Wirkung zu äußern beginnen, liegt für die verschiedenen Stoffe und verschiedenen Organismen sehr verschieden hoch. Was aber das Interessanteste ist, das ist die Tatsache, daß viele Stoffe, die in schwächerer Konzentration positiv chemotaktisch wirken, bei höheren Konzentrationsgraden eine negative Chemotaxis bei den gleichen Organismen veranlassen. Es existiert also ein Reizoptimum, dem die Organismen von beiden Seiten, sowohl aus der geringeren als aus der höheren Konzentration, zustreben. Wird die Konzentration bei diesen Stoffen zu stark, so tritt natürlich der Tod ein. Wir können also vier wichtige Konzentrationsgrade fixieren: den Nullpunkt, an dem der betreffende Stoff noch gänzlich fehlt, die Reizschwelle, an der seine Konzentration eben wirksam wird, das Optimum, dem die Organismen aus allen Konzentrationsgraden oberhalb der Reizschwelle zustreben, und den Tötungspunkt, bei dem die Konzentration zu stark ist, um das Leben noch zu gestatten (Fig. 232). Das Optimum liegt bei dem gleichen Stoff für verschiedene Organismen meist auch bei einem verschiedenen Konzentrationsgrad. Dafür hat MASSART[490] ein hübsches Beispiel in dem verschiedenen Verhalten einer Bakterienform, Spirillum, und einer Wimperinfusorienform, Anophrys, gegenüber dem Sauerstoff gefunden. Wenn er beide Organismenformen in größerer Zahl unter dem Deckglas hatte, so sammelten sie sich zwar beide als Wall an den Deckglasrändern oder um Luftblasen herum an, aber nicht unmittelbar an der Grenze zwischen Luft und Wasser, sondern jede Form in einer anderen Entfernung von der Sauerstoffquelle, die Anophrys näher, die Spirillen etwas entfernter von der Grenze. So kam das Sauerstoffoptimum für beide auf die deutlichste Weise in der Entfernung ihrer Anhäufung von der Sauerstoffquelle zum Ausdruck (Fig. 233 I und II). Die oben[491] erwähnten „Atmungslinien“ BEIJERINCKs sind ebenfalls solche chemotaktischen Ansammlungen von Bakterien in abgestuften Entfernungen von einer Sauerstoffquelle.
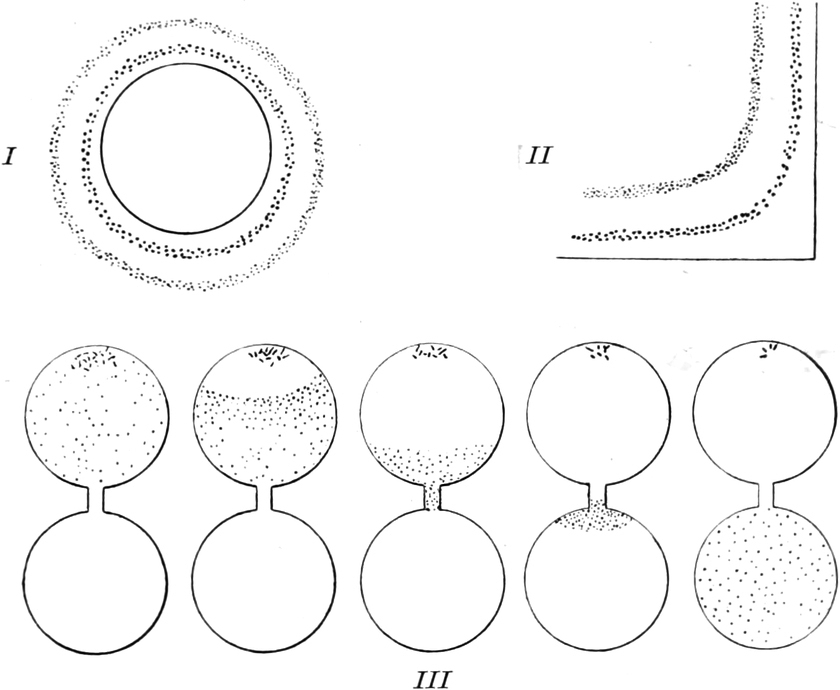
Fig. 233.
Chemotaxis von Bakterien und Infusorien
.
I
Luftblase unter dem Deckglas, umgeben von zwei Zonen, von denen die nähere aus
Anophrys
, die entferntere aus
Spirillen
besteht.
II
Rand des Deckglases.
Anophrys
und
Spirillen
bilden die gleichen Zonen.
III
Zwei Wassertropfen, die durch eine Wasserbrücke miteinander verbunden sind. Im oberen Tropfen liegt Kochsalz. Die im Tropfen befindlichen
Anophrys
wandern in den reinen Wassertropfen über, je mehr sich das Kochsalz löst. Nach M
ASSART
.
Unter den Wimperinfusorien sind die chemotaktischen Reizwirkungen früher weniger bekannt gewesen, doch hat bereits MASSART auch hier für einige Formen chemotaktische Eigenschaften gegenüber verschiedenen Stoffen nachweisen können. Es sei z. B. noch die negative Chemotaxis der bereits genannten Infusorienform Anophrys gegen Kochsalz angeführt, die sich in sehr einfacher Weise anschaulich machen läßt. MASSART legte an den Rand eines Tropfens, in dem sich zahlreiche Anophrys befanden, einige Kochsalzkriställchen und verband den Tropfen auf der gegenüberliegenden Seite durch eine schmale Wasserbrücke mit einem gleichgroßen Tropfen destillierten Wassers (Fig. 233 III). Die Folge war, daß die Infusorien die Stelle, an der das Kochsalz lag, um so mehr flohen, als das Salz sich löste und in seine Umgebung diffundierte, bis sie schließlich sämtlich durch die schmale Verbindung in den anderen Tropfen hinübergewandert waren.
Seit einer Reihe von Jahren hat JENNINGS[492] sehr umfassende und systematische Untersuchungen über die Chemotaxis der Infusorien gemacht und dabei eine Methode angewandt, die in mancher Beziehung große Vorteile bietet. JENNINGS stellt seine Versuche auf dem Objektträger unter einem großen Deckglase an, das von zwei dünnen Glasstäbchen unterstützt ist, so daß eine ziemlich dicke Schicht Wasser mit Infusorien zwischen Objektträger und Deckglas sich befindet. In diese Schicht, die frei sein muß von allen Beimengungen, bringt er mittels einer zu kapillarer Spitze ausgezogenen Pipette vorsichtig einen Tropfen der Lösung, die auf ihre chemotaktischen Wirkungen untersucht werden soll (Fig. 234 A). Die Stoffe dieser Lösung diffundieren alsbald in die umgebende Flüssigkeit, in der sich die Infusorien gleichmäßig zerstreut bewegen. Dadurch werden je nach der Wirkungsart der betreffenden Stoffe ganz charakteristische Wirkungen unter dem Deckglas erzielt. Sind die betreffenden Stoffe unwirksam, wie z. B. Zuckerlösungen, so schwimmen Paramäcien ungestört in den Tropfen hinein, und nach wenigen Sekunden ist die gleichmäßige Verteilung der Infusorien unter dem Deckglas wieder hergestellt. Wirkt der Tropfen negativ chemotaktisch, wie z. B. die Alkalien, so bildet sich an der betreffenden Stelle ein Kreis, der vollkommen frei ist von Paramäcien (Fig. 234 A). Wirkt der Tropfen aber positiv chemotaktisch, wie z. B. die meisten Säuren, so schwimmen sämtliche Paramäcien, die sich unter dem Deckglas befinden, in den Tropfen hinein (Fig. 234 B). Ist die wirksame Substanz dabei in einer Konzentration im Tropfen enthalten, die über dem Optimum liegt, so sammeln sich die Infusorien in einer Ringzone um den Flüssigkeitstropfen an (Fig. 234 C). Auffallend ist es, daß die Paramäcien, wie nach anderen Säuren, so auch nach Kohlensäure positiv chemotaktisch sind. Bringt man unter das Deckglas eine Blase chemisch reiner Kohlensäure und gleichzeitig zur Kontrolle eine gewöhnliche Luftblase, so sammeln sich die Paramäcien in dichter Masse um die Kohlensäureblase, während sie die Luftblase frei lassen (Fig. 234 D). In demselben Maße aber, wie die Kohlensäure in das Wasser hinein diffundiert und sich zu einer über das Optimum hinausgehenden Konzentration anhäuft, ziehen sich die Paramäcien in geschlossenem Kreise von der Kohlensäureblase zurück, weil sie gegen höhere Konzentrationen von Kohlensäure negativ chemotaktisch sind. Dadurch entstehen dann sehr charakteristische Bilder (Fig. 234 E). Da ferner die Paramäcien, wie alle Organismen, auch selbst Kohlensäure produzieren, so werden dort, wo sich viele Paramäcien aus irgendeinem Grunde angesammelt haben, immer noch mehr Individuen durch die von der Ansammlung produzierte Kohlensäure herbeigelockt. Wir haben hier also einen sehr interessanten Fall von Gesellschaftsbildung einfach auf Grund positiver Chemotaxis. In der Tat kann man durch Uebertragung eines Tropfens reinen Wassers aus einer solchen Ansammlung unter ein anderes Deckglas mit Paramäcien eine neue chemotaktische Ansammlung derselben erzielen, von der Art, wie sie Fig. 234 D zeigt.
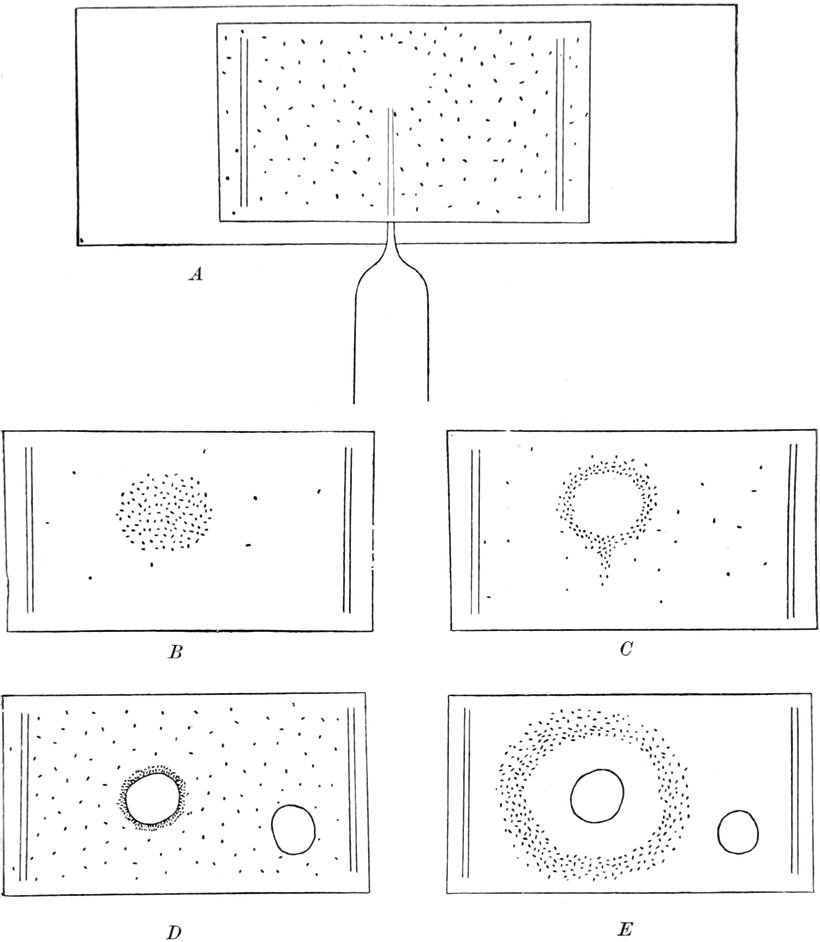
Fig. 234.
Chemotaxis von Paramaecium aurelia
.
A
Chemotaktisches Deckglaspräparat: Mit einer Kapillarpipette ist ein Flüssigkeitstropfen unter das Deckglas geführt worden, der negativ chemotaktisch wirkt.
B
Positiv chemotaktische Ansammlung.
C
Desgleichen bei zu hoher Konzentration der betreffenden Lösung: Die Paramäcien haben sich ringförmig im Optimum der Konzentration angesammelt.
D
Eine Kohlensäure- und eine Luftblase sind unter dem Deckglas: die erstere (links) wirkt positiv chemotaktisch; die letztere ist indifferent.
E
Dasselbe Präparat einige Minuten später: Die Kohlensäure ist in das umgebende Wasser diffundiert und hat durch ihre zu hohe Konzentration die Paramäcien vertrieben bis dahin, wo sie ihr Kohlensäureoptimum finden. Nach J
ENNINGS
.
Schließlich geben uns die chemotaktischen Reizwirkungen ein Mittel an die Hand, um uns annähernd einen Begriff davon zu machen, wie verschwindend kleine Reizgrößen es sind, die auf die lebendige Substanz noch eine sichtbare Wirkung auszuüben imstande sind. PFEFFER fand in seinen Versuchen, daß die Farnkrautspermatozoen noch eine deutliche Chemotaxis bekundeten, wenn er das Kapillarröhrchen mit einer Lösung von 0,001-proz. Apfelsäure beschickt hatte. Bedenkt man nun, daß die Apfelsäure erst in den Tropfen diffundieren muß, um ihre chemotaktische Wirksamkeit zu entfalten, so ergibt sich, daß die Menge, die auf die Spermatozoen einwirkt, eine noch weit geringere sein muß. Allein noch nicht genug. Für das Zustandekommen der chemotaktischen Wirkung kommt es ja nicht darauf an, daß eine bestimmte Menge des betreffenden Stoffes in der Umgebung des Organismus gleichmäßig verteilt ist, sondern darauf, daß ein Konzentrationsabfall von einer Stelle her stattfindet. Es ist also die Größe der Differenz in der Konzentration an den beiden Enden des Spermatozoons, die für das Zustandekommen der chemotaktischen Wirkung maßgebend ist. Da aber der Spermatozoenfaden nur die winzige Länge von 0,015 mm besitzt, so kann man sich ungefähr eine Vorstellung davon machen, wie ganz außerordentlich gering die Konzentrationsdifferenz an beiden Polen des Spermatozoons, mithin die Reizgröße sein muß, die noch eine chemotaktische Wirkung hervorruft. So geben uns gerade die chemotaktischen Reizwirkungen und, wie wir sehen werden, auch die analogen Tatsachen aus der Wirkungssphäre anderer Reize besser als alle übrigen Erfahrungen eine Vorstellung davon, wie überaus schwache Reize noch eine merkliche Wirkung auf die lebendige Substanz hervorrufen. Die lebendige Substanz ist ein ganz außerordentlich feines Reagens auf die geringsten Einwirkungen.
2. Barotaxis.
Alle mechanische Reizung der lebendigen Substanz besteht in einer Veränderung der Druckverhältnisse, unter denen sie sich befindet. Von der Einwirkung der kontinuitätstrennenden Zerquetschung oder Zerschneidung an bis zur leisesten Berührung und bis zur feinsten Abstufung des Luft- oder Wasserdruckes kann jede Veränderung der Druckverhältnisse als Reiz wirken. Bei einseitiger Einwirkung von Druckreizen, also in allen den Fällen, wo Druckdifferenzen an zwei verschiedenen Stellen des Körpers eines Organismus bestehen, sehen wir daher der Chemotaxis entsprechende Wirkungen zustande kommen, die wir, da sie sämtlich das Gemeinsame haben, daß sie durch ungleichseitig wirkenden Druck (βάρος) hervorgerufen werden, als „Barotaxis“ bezeichnen können. Auch die Barotaxis, von der wir je nach der Art des Druckes verschiedene Arten unterscheiden können, kann eine positive oder negative sein, je nachdem der Organismus sich nach der Seite des höheren oder niederen Druckes hinwendet.
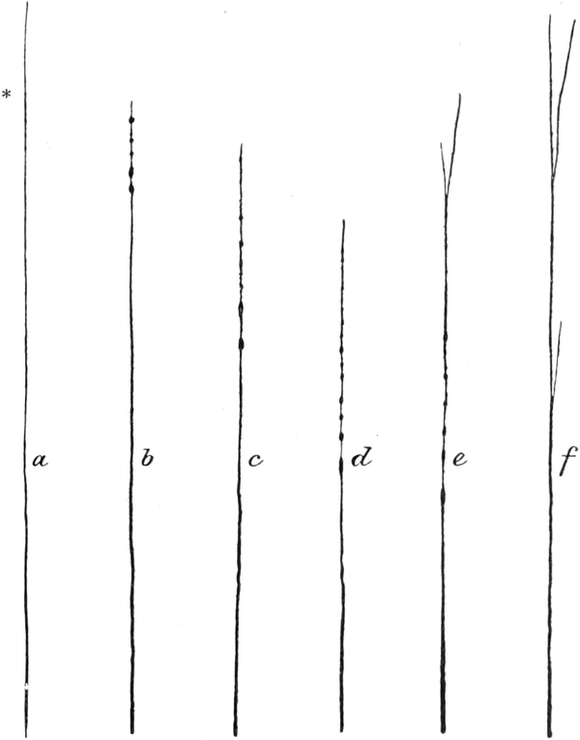
Fig. 235.
Pseudopodium von Orbitolites, in
a
bei * durchschnitten
.
b
,
c
,
d
,
e
,
f
aufeinanderfolgende Stadien der Reizwirkung.
Unter „Thigmotaxis“ können wir alle diejenigen Fälle der Barotaxis zusammenfassen, die durch mehr oder weniger starke Berührung der lebendigen Substanz mit festeren Körpern zustande kommen. Die einfachste Form derselben zeigen uns die nackten Protoplasmamassen, wie Rhizopoden, Leukocyten etc., und zwar liefern diese uns gerade ausgezeichnete Beispiele dafür, wie die schwache Berührung positive, die heftige Berührung negative Thigmotaxis hervorruft, wie also auch hier analog der Chemotaxis die verschiedene Intensität des Reizes von wesentlicher Bedeutung ist. Lassen wir z. B. einen marinen Rhizopoden, etwa den schon mehrfach erwähnten Orbitolites (Fig. 111, p. 281), ruhig in einem Glasschälchen mit Seewasser liegen, so beginnen nach einiger Zeit aus den kleinen Löchern der Kalkschale Pseudopodien herauszutreten, die, zunächst ganz kurze Fädchen vorstellend, frei im Wasser flottieren. Bald aber, indem sie länger und schwerer werden, senken sie sich mit den Enden auf die Unterlage, haften mittels eines feinen Sekrets hier fest, und nun beginnt das Protoplasma lebhaft auf der Unterlage entlang zu strömen, ohne sich je wieder frei ins Wasser zu erheben. Die lebendige Substanz der Rhizopoden verhält sich also der leisen Berührung mit der Unterlage gegenüber positiv thigmotaktisch und wendet sich der Unterlage zu. Die Ausstreckung und reiche Ausbreitung der Pseudopodien findet, abgesehen von den freischwimmenden Radiolarien, Heliozoen etc., immer im Kontakt mit irgendeinem Körper statt, sei es mit der Unterlage, sei es mit dem Deckglas oder dem Oberflächenhäutchen des Wassers, sei es schließlich mit irgendwelchen im Wasser liegenden Gegenständen. Umgekehrt können wir durch starke mechanische Reizung der Spitze eines lang ausgestreckten Orbitoliten-Pseudopodiums, am besten, wenn wir es mit einer Nadel drücken oder mit einem Messer an der Spitze durchschneiden, eine negative Thigmotaxis seiner lebendigen Substanz hervorrufen, indem sich das Protoplasma an der Reizstelle zu kleinen Kügelchen und Spindelchen zusammenballt und von der Reizstelle hinwegströmt (Fig. 235)[493]. Noch deutlicher ist die gleiche Wirkung bei einer schneller reagierenden Rhizopodenform des süßen Wassers, der gehäusetragenden Cyphoderia, zu beobachten, wo das Protoplasma des Pseudopodiums von der Reizstelle sich mit großer Geschwindigkeit zurückzieht (Fig. 236).
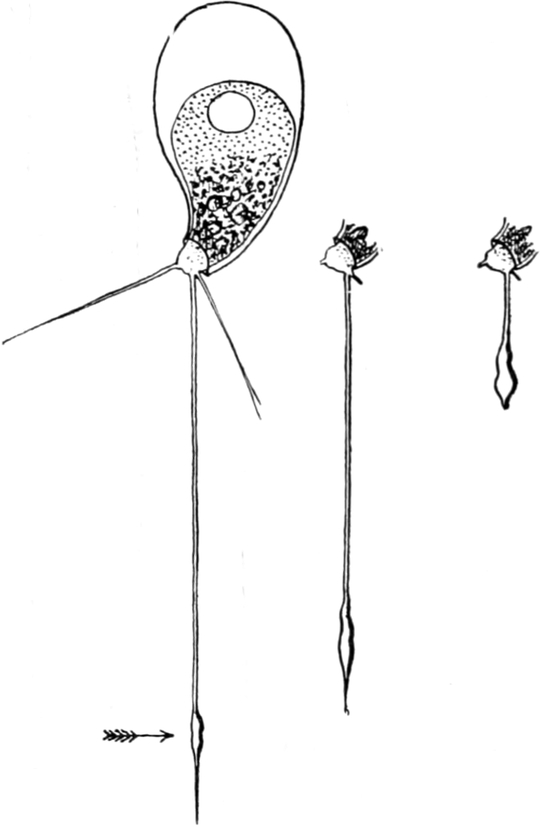
Fig. 236.
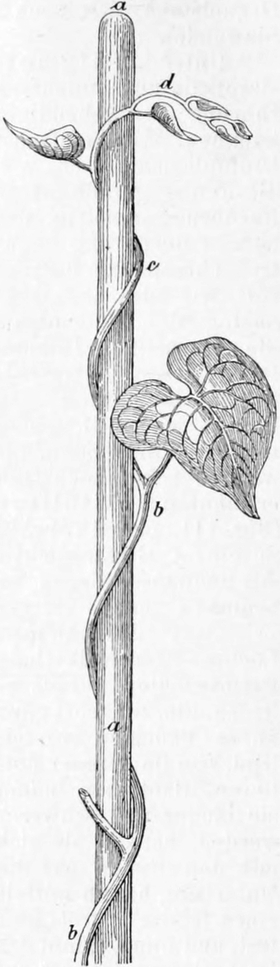
Fig. 237.
Fig. 236. Cyphoderia mit lang ausgestreckten Pseudopodien. Bei → gereizt. Das Protoplasma fließt von der Reizstelle weg.
Fig. 237. Positive Thigmotaxis einer Pflanze. a Stab, b, b, c, d Ranken. Nach SACHS.
Die thigmotaktischen Reizwirkungen sind weit verbreitet. Am bekanntesten sind sie im Pflanzenreich bei den Schlingpflanzen und Rankengewächsen, deren Stengel und Ranken sich den Gegenständen, mit denen sie in Berührung kommen, zuwenden, um in stetem Kontakt mit ihnen weiter zu wachsen (Fig. 237). Allein, schon in dem ziemlich gleichmäßig gebauten Zellenstaat der Pflanze sind die Verhältnisse so kompliziert, daß sich bei diesen Wirkungen das Verhalten der lebendigen Substanz in der einzelnen Zellulosekapsel gegenüber dem Reiz nicht ohne weiteres übersehen läßt, so daß wir bisher noch nicht sicher wissen, in welcher Weise die einzelne Zelle an dem Zustandekommen der thigmotaktischen Rankenkrümmung beteiligt ist.
An den Spermatozoen der Küchenschabe (Periplaneta orientalis) hat DEWITZ[494] eine positive Thigmotaxis entdeckt. Bringt man die Spermatozoen dieses Tieres in eine Kochsalzlösung von 0,6 Proz. zwischen Objektträger und Deckglas, so haben sich nach kurzer Zeit alle Individuen teils auf der Unterseite des Deckglases, teils an der Oberfläche des Objektträgers angesammelt und beschreiben hier durch den Schlag der Geißel kreisförmige Bogen, deren Richtung ausnahmslos dem Sinne der Uhrzeigerbewegung entgegengesetzt ist. Die Dicke der Flüssigkeitsschicht bleibt vollständig frei von den Spermatozoen, welche die Flächen des Glases, nachdem sie dieselben einmal erreicht haben, nicht wieder verlassen. Legt man eine Kugel in den Tropfen, so wird auch die Kugeloberfläche von ihnen aufgesucht. Auch wenn man eine mit Spermatozoen bevölkerte Kochsalzlösung in den Hohlraum einer Kugel bringt, ist nach kurzer Zeit die ganze Innenfläche von ihnen bedeckt und die Mitte der Flüssigkeit völlig verlassen. Die ausgesprochene Thigmotaxis dieser Spermatozoen ist ähnlich wie die positive Chemotaxis vieler anderer von größter Bedeutung für die Befruchtung der Eier.
Ein Gegenstück zu diesem Verhalten der Spermatozoen von Periplaneta liefert uns folgende Beobachtung an der Wimperinfusoriengattung Oxytricha, deren flacher, biegsamer Körper an seiner Unterseite mit Wimpern besetzt ist, die das Infusor ähnlich wie eine Assel als Beine benutzt, um damit auf den Gegenständen im Wasser umherzulaufen. Immer sieht man diese Infusorien auf dem Objektträger oder am Deckglas oder auf Schlammteilchen, die im Wasser liegen, geschäftig und rastlos umherlaufen, ohne daß sie jemals von selbst den Kontakt mit diesen Gegenständen verließen. Die Episode aus dem Leben einer Oxytricha, um die es sich hier handelt, illustriert aber diese positive Thigmotaxis ganz besonders. Es lagen in einem flachen Schälchen mit Flußwasser einige kugelrunde Eier der Flußmuschel Anodonta, und gleichzeitig befand sich eine Oxytricha im Wasser. Diese war auf irgendeine Weise beim Eingießen in Berührung mit einem der Eier gekommen und rannte nun unermüdlich auf der Kugeloberfläche des Eies umher, ohne dieselbe verlassen zu können (Fig. 238 C), da das Ei nur mit einem Punkte auf der ebenen Unterlage ruhte. Stundenlang lief das Infusor so auf der Eikugel umher und muß — seinen Weg auf eine gerade Linie übertragen — eine ganz enorme Strecke zurückgelegt haben. Nach vier Stunden endlich war es durch Vermittlung eines Schlammteilchens, das an die isoliert daliegende Eikugel gelangte, in der Lage, seinen Zwangsaufenthalt wieder zu verlassen. Experimente, die darauf mit anderen Oxytrichen künstlich die gleichen Verhältnisse nachahmten, ergaben ganz analoge Resultate.
Einen andern typischen Fall von positiver Thigmotaxis hat JENNINGS am Paramaecium beobachtet[495]. Bringt man nämlich unter ein Deckglas, unter dem sich zahlreiche Paramäcien gleichmäßig im Wasser zerstreut befinden, ein Fließpapierstückchen oder einen anderen Stoff mit rauher Oberfläche, so sieht man, daß nach einiger Zeit dieser Körper mit einem dichten Saum von Paramäcien besetzt ist, die ihn mit ihren Wimpern berühren, ohne sich vom Platze zu bewegen. Bei Anwendung von stärkeren Vergrößerungen zeigt sich, daß diejenigen Wimpern, welche in direkter Berührung mit dem Fremdkörper sind, gerade ausgestreckt vollkommen stillstehen (Fig. 239 A), und daß auch die Wimpertätigkeit am ganzen übrigen Körperumfange stark herabgesetzt, event. ganz aufgehoben ist. Wir haben hier also eine sehr ausgeprägte Thigmotaxis der Paramäcien vor uns. Bemerkenswert ist übrigens nebenbei, daß die thigmotaktische Ansammlung der Paramäcien durch ihre Kohlensäureproduktion immer neue Individuen chemotaktisch herbeilockt, so daß schließlich die sämtlichen Individuen des Tropfens (meist schon im Verlauf von 5–10 Minuten) um den Fremdkörper versammelt sind, ohne daß es den meisten überhaupt möglich wäre, in direkte Berührung damit zu treten, da derselbe von einem undurchdringlichen Wall thigmotaktisch gefesselter Individuen umgeben ist (Fig. 239 B). Die Thigmotaxis, welche die zufällig anschwimmenden Individuen veranlaßt zu bleiben, ist nur der erste Anlaß für die Ansammlung; die Chemotaxis nach der von ihnen produzierten Kohlensäure macht die Ansammlung dann vollständig.
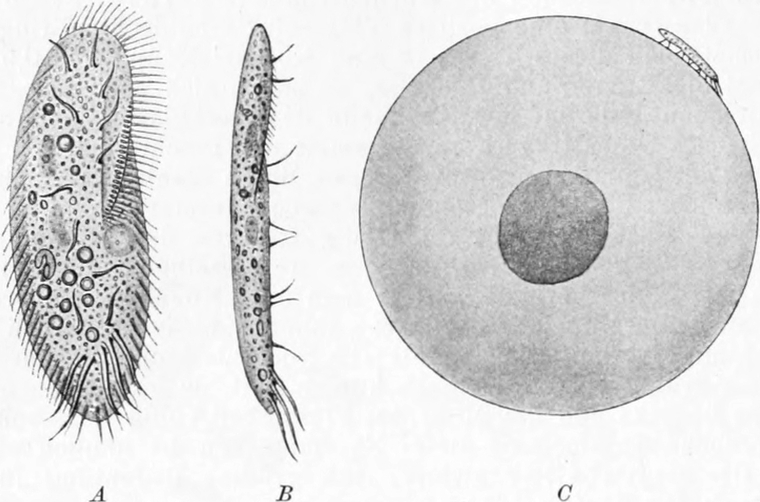
Fig. 238.
Oxytricha, ein Wimperinfusorium
.
A
Von unten,
B
von der Seite gesehen,
C
auf einem Muschelei umherlaufend.
Vor einigen Jahren hat PÜTTER[496] eine ausführliche Studie über die Thigmotaxis der einzelligen Organismen veröffentlicht, in der er zeigt, daß die Thigmotaxis sehr weit verbreitet in allen Klassen der Protisten vorkommt. Als die beiden charakteristischen Wirkungen der Kontaktreize, die zum Zustandekommen der thigmotaktischen Reizwirkungen wesentlich in Betracht kommen, sieht PÜTTER einerseits die Beeinflussung der Bewegungsorganoide (Pseudopodien, Geißeln, Wimpern) und anderseits die Abscheidung eines klebrigen Sekrets an. Letzteres Moment spielt bei Oscillarien, Diatomeen, Desmidiaceen, Gregarinen und Coccidien eine besonders wichtige Rolle. Sehr interessant sind ferner die Untersuchungen PÜTTERs über die Intensität der thigmotaktischen Reizwirkungen im Vergleich zu den Wirkungen anderer Reize. PÜTTER hat besonders thermische und galvanische Reize zum Vergleich herangezogen. Dabei hat sich herausgestellt, daß die hemmende Wirkung der schwachen Kontaktreize eine ganz unerwartet starke ist, daß die thigmotaktischen Infusorien beispielsweise bis zu einem sehr hohen Grade für thermische und galvanische Reize unerregbar sind, daß sie aber sofort ihre normale Erregbarkeit wieder annehmen, sobald ihr Kontakt mit den festen Gegenständen unterbrochen ist. Bei vielen Organismen (Euglena, Chilodon, Stylonychia, Spirostomum etc.) vermögen selbst die höchsten Temperaturen nicht die Thigmotaxis zu überwinden und die thigmotaktischen Individuen durch Erregung der Wimperbewegung zur Aufhebung ihres Kontakts zu veranlassen. Diese Organismen sterben bei höheren Temperaturen ab, ohne sich aus dem Kontakt zu trennen. Paramaecium dagegen löst sich bei 37° C, wo die Erregung der Wimpertätigkeit bei freischwimmenden Individuen einen ganz ungeheuren Grad erreicht, doch endlich vom Kontakt los und stürmt rasend davon. Hier überwindet also die durch den thermischen Reiz erzeugte heftige Erregung der Wimperbewegung die durch den Kontaktreiz herbeigeführte Hemmung derselben schließlich doch. Die Interferenz der Thigmotaxis mit der Galvanotaxis und die daraus resultierenden merkwürdigen Vorgänge werden weiter unten berührt werden.
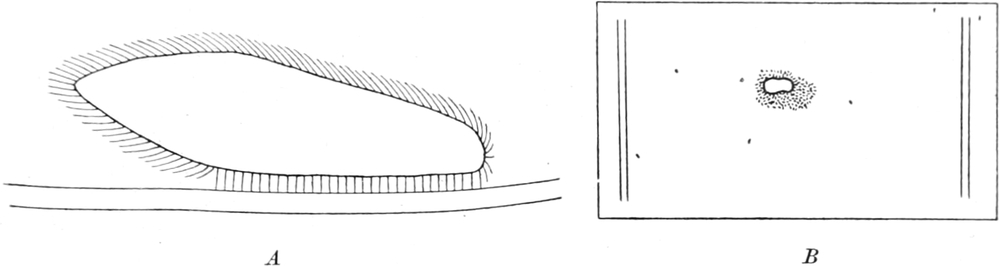
Fig. 239.
Thigmotaxis von Paramaecium
.
A
Ein Individuum in Berührung mit einer Fließpapierfaser. Die Wimpern, welche die Faser direkt berühren, stehen vollkommen still.
B
Ansammlung von Paramäcien um ein Fließpapierstückchen unter dem Deckglas. Nach J
ENNINGS
.
Eine zweite Form der Barotaxis, bei welcher der Druckreiz nicht wie bei der Thigmotaxis durch Berührung mit einem festen Körper, sondern durch den sanften Strom langsam fließenden Wassers erzeugt wird, ist die von SCHLEICHER entdeckte und von STAHL[497] genauer untersuchte „Rheotaxis“, d. h. die Eigentümlichkeit gewisser Organismen, fließendem Wasser gegenüber eine der Strömungsrichtung entgegengesetzte Bewegungsrichtung einzuschlagen. Da die Organismen sich demnach der Seite des Druckreizes zuwenden, so haben wir in der Rheotaxis nur eine spezielle Form der positiven Barotaxis zu erblicken. Die Rheotaxis ist bisher nur bei wenigen Organismen bekannt geworden. Am besten brachte sie STAHL bei Myxomycetenplasmodien, und zwar bei Aethalium septicum, durch folgenden Versuch zur Anschauung. Er hängte einen schmalen Fließpapierstreifen in ein mit Wasser gefülltes Becherglas, das etwas erhöht aufgestellt war, in der Weise, daß das eine Ende des Streifens in das Wasser eintauchte, während das andere über den Rand lang nach unten herabhing. Auf einem solchen Streifen besteht, wie man sich durch Anbringen einer Farbstoffmarke überzeugen kann, ein kontinuierlicher, langsamer Wasserstrom, der nach dem herabhängenden Ende gerichtet ist. Dieses Ende legte STAHL auf einen Lohehaufen, in dem sich Plasmodien von Aethalium befanden. Die Folge war, daß die Plasmodien langsam von dem Lohehaufen an dem Streifen in die Höhe krochen und sich schließlich über den Becherglasrand hinüber an der Innenseite des Glases abwärts, bis an die Wasseroberfläche hin, ausbreiteten. Durch geeignete Kontrollversuche konnte sichergestellt werden, daß es in der Tat nur das strömende Wasser war, das den Reiz für diese Bewegung lieferte.
Auch an Paramäcien hat JENNINGS[498] in neuerer Zeit rheotaktische Bewegungen experimentell hervorrufen können, indem es ihm gelang, in engen Glasröhren Wasserströmungen in ihrer Geschwindigkeit so abzustufen, daß er eine Strömungsgeschwindigkeit erhielt, bei der die Paramäcien nicht mehr passiv mit fortgerissen werden. Unter solchen Bedingungen läßt sich eine Strömungsgeschwindigkeit finden, bei der die Infusorien sich mit ihrer Längsachse in die Strömungsrichtung einstellen und gegen den Strom vorwärts schwimmen. Es ist anzunehmen, daß diese Reaktionsweise auf Wasserströmungen auch bei anderen freibeweglichen Infusorienformen vorkommt.
Leider sind die rheotaktischen Eigenschaften anderer Organismen noch wenig untersucht. Es ist aber sehr wahrscheinlich, daß die Rheotaxis weiter verbreitet ist. Unter anderem lag es nahe, anzunehmen, daß auch die menschlichen Spermatozoen rheotaktisch sind und vermöge ihrer Rheotaxis den Weg zur Eizelle finden, denn wenn die Spermatozoen in die Uterushöhle des Weibes hineingelangt sind, so treffen sie hier auf einen ihnen entgegenkommenden Strom schleimiger Flüssigkeit, da das Flimmerepithel, das die Uterushöhle auskleidet, eine nach dem Muttermunde hin gerichtete Schlagrichtung besitzt, mithin einen nach außen gerichteten Strom erzeugt. Daß es eine Chemotaxis der Spermatozoen nach dem Ei wäre, die ihnen in diesem Falle den Weg wiese, wird sehr unwahrscheinlich, wenn man bedenkt, daß die Spermatozoen auch dann im Uterus in die Höhe wandern, wenn das Ei den Eierstock-Follikel noch gar nicht verlassen hat. In der Tat ist es denn auch ROTH[499] gelungen, experimentell zu zeigen, daß die Spermatozoen und ebenso gewisse Bakterien rheotaktisch sind, indem er unter dem Deckglas eine schwache kontinuierliche Strömung erzeugte und dabei sah, daß diese einzelligen Organismen sich der Strömung entgegen bewegten. Für Spermatozoen des Hundes speziell hat WINTERSTEIN in anderweitig nicht veröffentlichten Versuchen diese Angaben ROTHs bestätigen können. Es liegt auf der Hand, welche große biologische Bedeutung der Rheotaxis der Spermatozoen bei den höheren Wirbeltieren zukommt, und diese Bedeutung wird, wie KRAFT[500] hervorhebt, noch erhöht dadurch, daß der Flüssigkeitsstrom im Uterus resp. Eileiter gewissermaßen eine Selektion unter den Spermatozoen ausübt, indem er nur den kräftigen Exemplaren gestattet, sich den Weg aufwärts, den Weg zur Befruchtung zu erringen. Die Schwächlinge bleiben auch hier zurück, ohne ihr Ziel zu erreichen.
Als eine dritte Form der Barotaxis schließlich haben wir die „Geotaxis“ aufzufassen, d. h. die Tatsache, daß sich gewisse Organismen mit ihrer Medianachse in ganz bestimmter Richtung zum Erdmittelpunkt einstellen und bewegen. Den Druckreiz liefern in diesem Falle die minimalen Druckdifferenzen, die sich sowohl im Wasser als auch in der Luft an Punkten verschiedener Höhe finden.
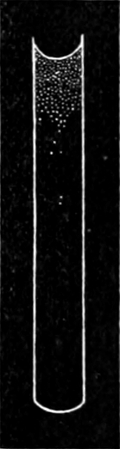
Fig. 240.
Glasröhrchen mit Paramäcien
, die sich infolge ihrer negativen Geotaxis am oberen Ende angesammelt haben. Nach J
ENSEN
.
Die geotaktischen Reizwirkungen sind am längsten in der Botanik bekannt, denn die Pflanzen sind sämtlich in ausgezeichneter Weise geotaktisch. Die Wurzeln wachsen dem Erdmittelpunkt zu und sind positiv geotaktisch, die Stengel und Stämme wachsen vom Erdmittelpunkt weg, sind also negativ geotaktisch, und schließlich sehen wir in dem Verhalten der Blätter und in vielen Fällen der Zweige, die stets im wesentlichen tangential zur Erdoberfläche wachsen, eine transversale Geotaxis.
An freilebenden Zellen sind besonders von SCHWARZ[501], ADERHOLD[502], MASSART[503], JENSEN[504] und SOSNOWSKI[505] geotaktische Eigenschaften festgestellt worden, indem diese Forscher fanden, daß Infusorien und Bakterien in Glasgefäßen mit Wasser teils in die Höhe steigen und sich ansammeln, teils die Tiefe aufsuchen und sich am Boden scharen. Bringt man z. B. in eine senkrecht stehende Glasröhre Wasser, in dem sich zahlreiche Paramäcien befinden, so steigen diese Infusorien, wie JENSEN fand, in kurzer Zeit in die Höhe und sammeln sich am oberen Ende an (Fig. 240), mag dasselbe offen oder verschlossen sein. Die Paramäcien sind also negativ geotaktisch. Umgekehrt verhalten sich, wie MASSART beobachtete, manche Bakterienformen, die sich bei gleicher Versuchsanordnung am unteren Ende der Röhre versammeln. Diese Bakterien sind demnach positiv geotaktisch. Uebrigens hat SOSNOWSKI gezeigt, daß sich auch die sonst immer negativ geotaktischen Paramäcien künstlich positiv geotaktisch machen lassen, wenn sie unter gewisse Temperaturen gebracht oder mechanisch durch Schütteln gereizt werden, doch spielt bei dieser Umwandlung der negativen in die positive Geotaxis auch der Zustand und das Alter der Paramäcienkultur eine Rolle, die noch weiterer Aufklärung bedarf.
Man hat sich bis in die neueste Zeit entweder gar keine oder halb mystische Vorstellungen darüber gemacht, wie die Schwerkraft die geotaktischen Reizwirkungen erzeuge, bis JENSEN zeigte, daß es die Druckdifferenzen an den Punkten verschiedener Höhe sind, welche diese Wirkungen hervorrufen. Bekanntlich ist der hydrostatische Druck in einer Wassersäule oben bedeutend geringer als unten. Der höhere Druck wirkt daher z. B. auf die Paramäcien als Reiz und veranlaßt sie, sich von den Stellen höheren Druckes abzuwenden und die Stellen des geringsten Druckes aufzusuchen. Andere Unterschiede sind, wie jede Ueberlegung ohne weiteres zeigt, zwischen dem oberen und dem unteren Teil der Flüssigkeitssäule in der senkrecht stehenden Glasröhre nicht vorhanden. Ein unbefangener Beobachter muß also sofort in den geotaktischen Reizwirkungen eine Druckwirkung erkennen. Daß sie das aber in der Tat auch sind, konnte JENSEN durch Versuche auf der Zentrifugalscheibe zeigen, indem er in horizontal liegenden Röhren, in denen unter gewöhnlichen Verhältnissen keine geotaktische Ansammlung der Paramäcien eintreten kann, durch Zentrifugieren in der Richtung des Zentrifugalscheibenradius den Druck am peripherischen Ende gegenüber dem zentralen Ende steigerte und so künstlich die Verhältnisse nachahmte, die nach den Gesetzen der Erdschwere in einer senkrecht stehenden Röhre herrschen. Der Erfolg war der, daß sich auch auf der Zentrifuge die Paramäcien bei nicht zu schnellem Drehen an den Stellen des niedrigeren Druckes, d. h. an dem zentralen Ende der Röhre, ansammelten, eine Reizwirkung, die JENSEN der Geotaxis als „Zentrotaxis“ an die Seite stellt. Die Ansammlung stellt sich mit derselben, ja, bei geeigneter Geschwindigkeit häufiger mit noch größerer Sicherheit ein wie in der senkrecht stehenden Röhre. Wird zu schnell zentrifugiert, so werden natürlich die Infusorien passiv als spezifisch schwerere Körper nach der Peripherie hin geschleudert.
Wir müssen schließlich auch die Geotaxis der höheren Pflanzen, die in der Botanik so lange Zeit eine eigene Stellung eingenommen hat, als einen speziellen Fall der barotaktischen Reizwirkungen betrachten, doch liegen hier, wie bei den geotaktischen Reizwirkungen der Metazoen, die Verhältnisse insofern etwas anders, als bei beiden besondere Organe, die „Statolithenorgane“[506], speziell für die Vermittlung der geotaktischen Einstellung differenziert sind. Diese Statolithenorgane, deren Prinzip darin besteht, daß spezifisch schwerere, bewegliche Körnchen, die immer, der Erdschwere folgend, nach unten streben, durch ihren Druck gewisse Zellen des vielzelligen Körpers mechanisch reizen, sind im Tierreich seit langer Zeit bekannt und so, wie diese Statolithen im Tierreich sind neuerdings gleichzeitig von HABERLANDT[507] und NĚMEC[508] die Stärkekörner im Pflanzenreich als Vermittler der geotaktischen Reizwirkungen nachgewiesen worden.
3. Phototaxis.
Es liegt in der physikalischen Natur der Lichtbewegung, daß der Lichtstrahl von einer Lichtquelle aus in gerader Richtung durch den Raum sich fortpflanzt und mit der Entfernung an Intensität verliert. Demnach haben zwei in der Richtung eines Lichtstrahls gelegene Punkte verschiedene Lichtintensität, der Punkt, welcher der Lichtquelle näher liegt, größere, der, welcher entfernter gelegen ist, geringere. Der Lichtstrahl erfüllt also in vollkommener Weise die Bedingungen, die zum Zustandekommen einseitiger Reize erforderlich sind, ja, es dürfte sogar auf die größten Schwierigkeiten stoßen, Bedingungen herzustellen, unter denen ein Organismus durch Licht allseitig gleichmäßig gereizt würde. Infolgedessen bringt auch die Lichtreizung sehr ausgesprochene bewegungsrichtende Wirkungen hervor, die als „Phototaxis“[509] bezeichnet worden sind und das vollkommene Analogon zur Chemotaxis und Barotaxis bilden.
Am längsten bekannt ist das Vorkommen der Phototaxis wieder bei den Pflanzen, wie ja die Pflanzenphysiologie wegen der geringeren Komplikation der Objekte sich überhaupt viel früher zu einer methodischen Vollkommenheit entwickeln konnte als die Tierphysiologie. Jeder, der Blumen im Zimmer zieht, hat die Tatsache der positiven Phototaxis täglich vor Augen. Er sieht, wie die im Wachstum begriffenen Teile sich immer und immer wieder dem Lichte zuwenden, und muß, um eine gerade in die Höhe wachsende Pflanze zu bekommen, den Topf von Zeit zu Zeit umdrehen, damit die phototaktische Krümmung nach der anderen Seite wieder kompensiert wird. Manche Pflanzen sind so ausgesprochen phototaktisch, daß sie bei hellem Sonnenschein im Garten in einem Tage den ganzen Lauf der Sonne durch ihre phototaktische Krümmung begleiten. Wer z. B. an einem schönen Sommertage ein Beet von blauen Gentianen beobachtet, sieht, daß die Pflanzen ihre prachtvollen Blüten sämtlich mit der breiten offenen Fläche der Sonne zukehren und die langsame Bewegung der Sonne in dieser Stellung verfolgen, so daß ihre Blüten am Abend fast die entgegengesetzte Richtung haben, wie am Morgen. Bei manchen Pflanzen wird, wie STAHL[510] an Schachtelhalmen gezeigt hat, die Wachstumsrichtung bereits an der Sporenzelle durch das Licht in sehr interessanter Weise beeinflußt, indem bei der Teilung der Sporenzelle die erste Scheidewand, welche sie in zwei Teile zerschnürt, senkrecht zur Richtung der auffallenden Lichtstrahlen gebildet wird, und zwar macht sich schon hier ein charakteristischer Unterschied in der Art der Phototaxis beider Hälften bemerkbar, so daß die Rhizoidzelle, aus der die späteren Wurzeln sich entwickeln, stets von der Lichtquelle abgewendet, die Prothalliumzelle, aus der sich die oberirdischen Teile bilden, dagegen der Lichtquelle zugekehrt ist (Fig. 241).
Im Tierreich haben die Untersuchungen von LOEB[511] und DRIESCH[512] ebenfalls weit verbreitet phototaktische Reizwirkungen nachgewiesen. Allein, da das Zustandekommen dieser Reaktionen, wenn es schon beim Zellenstaat der Pflanze nicht ganz übersichtlich ist, noch viel mehr im komplizierten Zellenstaat des Tierkörpers wegen der mannigfaltigen Beteiligung der Sinnesorgane, des Nervensystems, der Bewegungsorgane etc. an Uebersichtlichkeit verliert, so ist es zweckmäßig, wenn wir auch hier wieder unsere Betrachtung vor allem an die einfachsten Verhältnisse, wie sie in der freilebenden Zelle bestehen, anknüpfen.
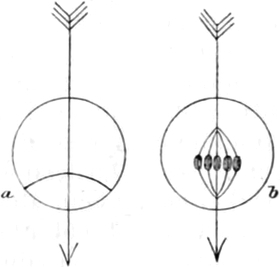
Fig. 241.
Teilung der Sporenzelle eines Schachtelhalms unter dem Einfluß des Lichts
. Der Pfeil gibt die Richtung der Lichtstrahlen an.
a
Lage der Zellteilungswand,
b
Richtung der Kernteilungsfigur. Nach S
TAHL
.
Von PRIESTLEY und EHRENBERG bereits beobachtet, wurden die phototaktischen Reaktionen der einzelligen Organismen von NÄGELI, HOFMEISTER, BARANETZKY, STAHL, KLEBS, COHN und anderen Botanikern weiter verfolgt, aber erst die grundlegenden Arbeiten von STRASBURGER gaben uns ein genaues Bild von der Gesetzmäßigkeit dieser Reizwirkungen.
STRASBURGER[513] machte seine Untersuchungen hauptsächlich an Schwärmsporen von verschiedenen chlorophyllhaltigen Algen und beobachtete ihr Verhalten gegenüber dem einseitig vom Fenster einfallenden Lichte im hängenden Tropfen. Dabei zeigten sich bei den Geißelschwärmern der verschiedensten Art im wesentlichen die gleichen Wirkungen. Als Typus kann uns das Verhalten der Ulothrix-Schwärmer dienen. Im diffusen Tageslicht von einer geringen Intensität eilen diese kleinen Geißelzellen in geraden Bahnen nach demjenigen Rande des Tropfens, der dem Lichte zugekehrt ist, und sammeln sich hier in großen Scharen an. Steigert man die Intensität des Lichtes, was STRASBURGER dadurch erreichte, daß er das Präparat dem Fenster näherte oder direktes Sonnenlicht einwirken ließ, so beginnen von einer bestimmten Intensität an die Schwärmsporen den „positiven Tropfenrand“, d. h. in den Rand, welcher der Lichtquelle zugekehrt ist, zu verlassen und sich nach dem „negativen“, d. h. dem gegenüberliegenden Tropfenrand zu begeben, bis bei weiter gesteigerter Lichtintensität alle am negativen Tropfenrand versammelt sind. Es existiert also ein Lichtintensitätspunkt, dem die Schwärmer zueilen, indem sie sich sowohl von höherer als auch von geringerer Intensität her nach ihm hin begeben, eine Tatsache, die STRASBURGER als „Photometrie“ bezeichnet. Wir haben hier ein vollständiges Analogon zur Chemotaxis, die bis zu einer bestimmten Konzentration des wirksamen Stoffes positiv ist, von da an aber bei steigender Konzentration negativ wird, so daß wir auch von einer „Chemometrie“ sprechen könnten. Ganz analog den Ulothrix-Schwärmern verhalten sich die Schwärmer von Chaetomorpha, Ulva, Haematococcus und einigen anderen Algen, sowie des Geißelinfusors Chilomonas Paramaecium und die farblosen Schwärmer der Chytridien, die sämtlich bei geringerer Lichtintensität positiv, bei höherer Intensität negativ phototaktisch sind. Indessen gibt es auch Formen, die, wie z. B. die Schwärmer von Botrydium granulatum, bei allen Lichtintensitäten positive Phototaxis zeigen.
Diesen Untersuchungen STRASBURGERs schließt sich eine ganze Reihe von Beobachtungen anderer Forscher an, die bei den verschiedenartigsten Mikroorganismen phototaktische Reizwirkungen feststellen konnten. So untersuchte STAHL[514] die schon von HOFMEISTER und BARANETZKY beobachtete Phototaxis der Myxomyceten-Plasmodien und fand, daß junge Plasmodien von Aethalium septicum im Halbdunkel positiv phototaktisch sind und an die Oberfläche der Gerberlohe kriechen, bei stärkerer Beleuchtung dagegen negativ phototaktisch werden und wieder in das Innere der Lohehaufen zurückfließen.
Ferner fand ENGELMANN[515] in Bacterium chlorinum und Bacterium photometricum zwei Bakterienformen, die phototaktische Eigenschaften besitzen und sich im Lichte ansammeln.
ENGELMANN[516], STAHL[517], ADERHOLD[518] und andere[519] stellten die phototaktischen Wirkungen auch bei den Diatomeen und Oscillarienfäden fest, die sich genau wie die Algenschwärmer verhalten und sehr ausgesprochene Ansammlungen bilden (Fig. 242).
Ebenso wiesen STAHL (l. c.), KLEBS[520] und ADERHOLD (l. c.) auch bei den Desmidiaceen phototaktische Bewegungen nach und zeigten, daß diese Algenzellen sich mit ihrer Längsachse parallel zum Einfall der Lichtstrahlen einstellen und sich in dieser Stellung durch Absonderung ihres Sekretes in ihrer eigentümlichen Weise nach der Lichtquelle hin oder bei stärkerer Intensität von der Lichtquelle weg auf der Unterlage fortschieben (Fig. 243), so daß in einem Präparat mit lebendigen Closterien[521] oder Pleurotänien alle Individuen mit ihrer Längsachse parallel untereinander und zur Einfallsrichtung der Lichtstrahlen eingestellt sind. Schließlich sind auch bei Infusorien phototaktische Reaktionen nachgewiesen worden, bisher aber nur von solchen Formen, die Farbstoffe in ihrem Protoplasma besitzen, welche für dasselbe als Sensibilisatoren dienen[522]. Die farblosen Infusorien sind ja zum größten Teil für sichtbare Lichtstrahlen nicht empfänglich. So hat JENNINGS[523] an dem blaß gefärbten Stentor coeruleus eine negative Phototaxis feststellen können. Wird der Wassertropfen, in dem die Stentoren frei umherschwimmen, auf der einen Hälfte verdunkelt, so sammeln sich sehr bald alle Individuen in diesem verdunkelten Teile an. Gelangen sie bei ihrem Umherschwimmen gelegentlich an die Lichtgrenze, so führen sie eine Bewegung aus, die sie wieder in den dunklen Teil des Tropfens zurückführt.
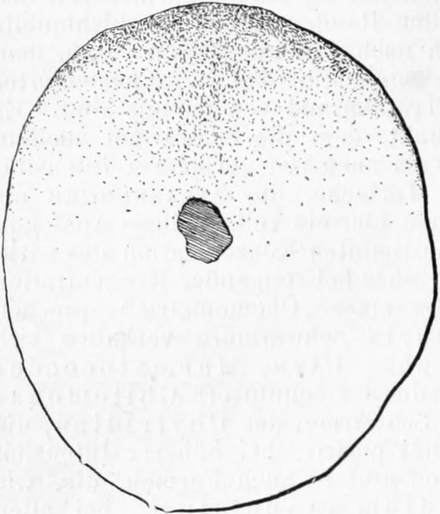
Fig. 242.
Phototaxis der Diatomeen
. In einem Tropfen liegt in der Mitte ein Schlammfetzen, der mit Diatomeen dicht besetzt war. Die Diatomeen sind sämtlich nach dem der Sonne zugekehrten Tropfenrande gekrochen.
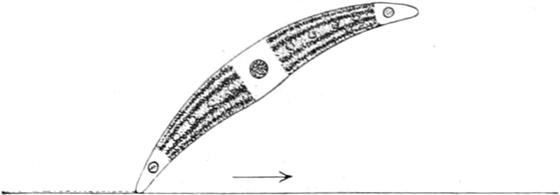
Fig. 243.
Phototaxis von Closterium
. Das Licht fällt von rechts her ein. Der Pfeil gibt die Gleitrichtung des Closteriums an.
So finden wir, daß die Phototaxis unter den einzelligen Organismen, soweit sie überhaupt durch Lichtstrahlen reizbar sind, eine weit verbreitete Reizwirkung ist.
Nachdem die phototaktischen Reizwirkungen festgestellt worden waren, mußte die Frage aufgeworfen werden, ob die verschiedenen Strahlen des Spektrums in gleicher Weise phototaktisch wirksam seien, eine Frage, die am leichtesten durch Einschaltung von farbigen Gläsern und Lösungen zwischen Lichtquelle und Objekt entschieden werden konnte. Die dabei verwendeten Medien waren so gewählt, daß sie nur Strahlen eines bestimmten Teiles des Spektrums durchließen, so daß nur Strahlen von gewissen Wellenlängen auf die Organismen fallen konnten (Fig. 244). Auf diese Weise stellte bereits COHN und später STRASBURGER fest, daß im allgemeinen die kurzwelligen Strahlen des Spektrums, also besonders die blauen und violetten, wirksamer sind als die langwelligen, etwa die roten, die bei nicht zu hohen Intensitätsgraden wie völlige Dunkelheit wirken. Nach den oben angeführten Ergebnissen der klassischen Untersuchungen HERTELs ist diese Tatsache ohne weiteres verständlich.
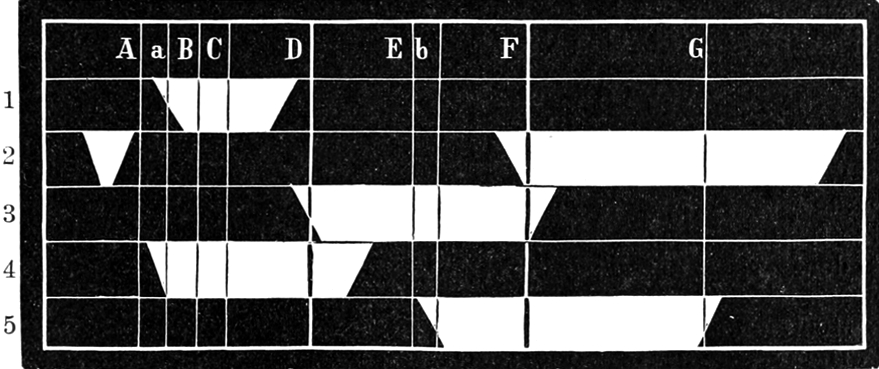
Fig. 244.
Spektra von verschiedenen Medien
. 1 Spektrum eines roten Glases, 2 Spektrum eines Kobaltglases, 3 Spektrum eines grünen Glases, 4 Spektrum einer Kalibichromatlösung, 5 Spektrum einer Kupferoxyd-Ammoniaklösung.
Noch ein Punkt verdient schließlich bei der Besprechung der phototaktischen Reaktionen Erwähnung. Nach unserer ganzen bisherigen Betrachtung und nach Analogie mit den bewegungsrichtenden Wirkungen der anderen Reize liegt es auf der Hand, daß nur die Differenz in der Intensität der Belichtung an verschiedenen Körperstellen eine bewegungsrichtende Wirkung hervorbringen kann, denn wo der Reiz von allen Seiten in gleicher Intensität auf die Körperoberfläche einwirkt, da fällt der Grund für eine bestimmte Achseneinstellung fort, wie das am deutlichsten bei der allseitigen Einwirkung chemischer Reize zu beobachten ist. Obwohl diese Ueberlegung ohne weiteres einleuchtet, haben dennoch einzelne Forscher, wie SACHS, LOEB und DAVENPORT geglaubt, nicht sowohl die Intensitätsdifferenzen als vielmehr die „Richtung“ der Lichtstrahlen für das Zustandekommen der phototaktischen Reaktionen verantwortlich machen zu sollen. Es ist schwer, sich von dem Reaktionsmechanismus nach dieser seltsamen Theorie eine Vorstellung zu machen, denn da eine Achseneinstellung nur möglich ist, wo Differenzen an zwei verschiedenen Punkten der Körperoberfläche bestehen, so bleibt es ziemlich unverständlich, wie die „Richtung“ der Strahlen als solche, die an allen Punkten des Körpers dieselbe ist, eine solche Wirkung hervorrufen könnte. In der Natur freilich fällt unter gewöhnlichen Bedingungen die Intensitätsabnahme mit der Richtung der Strahlen zusammen, und infolgedessen sehen wir immer die phototaktischen Bewegungen innerhalb der Richtung der Lichtstrahlen erfolgen. Allein experimentell läßt sich doch der Intensitätsabfall von der Fortpflanzungsrichtung der Lichtstrahlen sehr gut trennen. Eine sehr geeignete Anordnung hat zu diesem Zwecke OLTMANNS[524] mit Benutzung einer bereits von STRASBURGER verwendeten Idee aufgestellt. OLTMANNS stellte sich aus zwei Glasplatten, die unter einem spitzen Winkel von 2° zueinander geneigt waren, einen Keil her, indem er den Raum zwischen beiden Platten mit einer von Tusche getrübten Gelatineschicht füllte. Diese Keilplatten ließen an ihrem dünnen Ende nahezu alles Licht hindurch, während sie an ihrem dicken Ende, wo die Tuschgelatineschicht am dunkelsten war, sehr viel Licht absorbierten. Fällt daher das Licht senkrecht zur Fläche der Keilplatten auf diese auf, so liegt für die in einem dunklen Kästchen dahinter befindlichen Objekte der größte Intensitätsabfall senkrecht zur Einfallsrichtung der Lichtstrahlen. Mittels dieser Platten läßt sich denn in der Tat bei Anwendung geeigneter Lichtstärken experimentell beweisen, daß es nicht die Richtung an sich, sondern lediglich die Intensitätsdifferenz an verschiedenen Stellen der Körperoberfläche ist, welche die phototaktischen Reizwirkungen erzeugt, wie das von vornherein bei einfacher Ueberlegung nicht anders zu erwarten ist.
4. Thermotaxis.
Wie das Licht gestattet auch die Wärme eine sehr leichte Anwendung einseitiger Reizung, da die Wärme, sei es, daß sie sich durch Leitung, sei es, daß sie sich durch Strahlung fortpflanzt, immer mit der Entfernung von der Wärmequelle abnimmt, so daß in der gleichen Richtung von der Wärmequelle an zwei verschiedenen Punkten des Mediums stets Temperaturdifferenzen bestehen.
Die erste Beobachtung thermotaktischer Eigenschaften machte STAHL[525] an den Plasmodien von Aethalium septicum. Er stellte zwei Bechergläser, deren eines mit Wasser von 7°, deren anderes mit Wasser von 30° gefüllt war, nebeneinander auf und legte einen Streifen Fließpapier, auf dem sich das Myxomycetenplasmodium ausgebreitet hatte, in der Weise über ihre Ränder, daß das eine Ende des Plasmodiums in das kühlere, das andere in das wärmere Wasser tauchte. Alsbald fing das Protoplasma des Plasmodiennetzwerkes an, aus dem kühlen Wasser heraus- und in der Richtung nach dem wärmeren Wasser hinüberzuströmen, obgleich es vor dem Versuch die entgegengesetzte Kriechrichtung befolgte. Schließlich hatte sich die ganze Protoplasmamasse nach dem warmen Wasser hinübergezogen. Wir haben also hier einen Fall von positiver Thermotaxis.
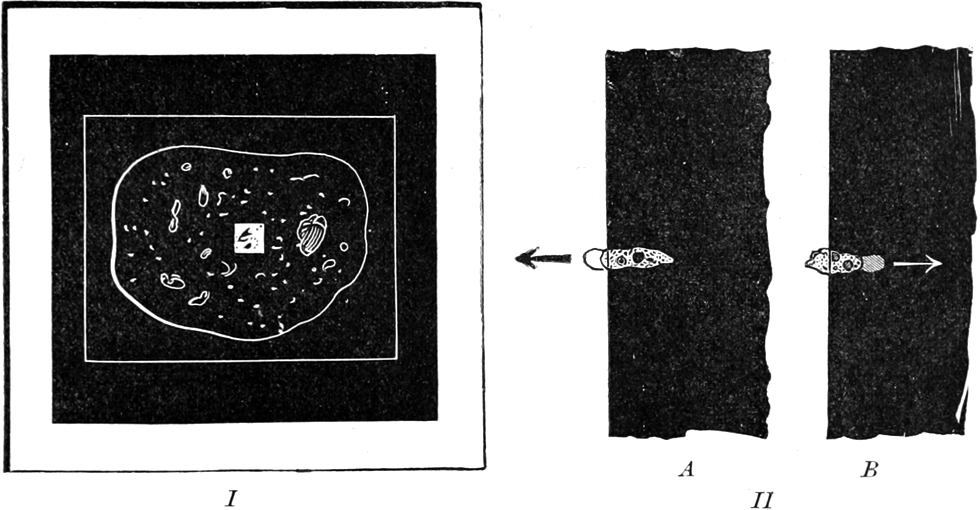
Fig. 245.
Negative Thermotaxis der Amöben
.
I
Auf einem großen Deckglas befindet sich eine Wassermasse mit vielen Amöben. Das Deckglas liegt über einem schwarzen Grunde, der in der Mitte einen scharfen viereckigen Ausschnitt hat. Durch Verschieben des Deckglases kann eine Amöbe gerade so eingestellt werden, daß sie beim Verfolg ihrer Kriechbahn über die Grenze des Ausschnittes kriecht,
II A
. Wird dann plötzlich das konzentrierte Sonnenlicht vom Mikroskopspiegel durch den Ausschnitt gelassen, so kriecht die Amöbe sofort wieder in das kühle Dunkel zurück,
II B
. Die Pfeile geben die Kriechrichtung an.
Eine negative Thermotaxis können wir bei Amöben[526] beobachten, wenn wir auf eine Körperstelle eine Temperatur von mindestens 35° C einwirken lassen, während der übrige Protoplasmaleib sich unter niedrigerer Temperatur befindet. Das ist mittels geleiteter Wärme kaum zu erreichen. Wir benutzen daher strahlende Wärme und treffen folgende Anordnung. Ein größerer Wassertropfen, der viele Individuen von Amoeba limax enthält, wird auf ein großes und dünnes Deckglas gebracht und über eine mit schwarzem Papier beklebte Glasplatte gelegt. Das schwarze Papier dieser Platte besitzt in der Mitte einen kleinen, sehr scharfrandigen Ausschnitt. Unter dem Mikroskop, dessen Konkavspiegel so eingestellt ist, daß er das grelle Sonnenlicht auffängt und durch das Diaphragma reflektiert, wird nach Zwischenschaltung einer undurchsichtigen Platte zwischen Objekttisch und Spiegel bei auffallendem Lichte eine Amöbe gerade so eingestellt, daß sie im Verfolg ihrer Kriechrichtung über die Grenze des schwarzen Papiers kriechen muß. Sobald die Amöbe mit ihrem vorderen Ende die Grenze des Ausschnittes überschritten hat, wird plötzlich die undurchsichtige Platte zwischen Spiegel und Objekttisch entfernt, so daß nun die konzentrierten Sonnenstrahlen auf das vordere Ende der Amöbe fallen, während das hintere sich noch im Schatten des schwarzen Papiers befindet. Die Folge ist, daß die Amöbe sogleich ihre bisherige Kriechrichtung ändert und wieder in den Schatten zurückfließt (Fig. 245). Daß es sich hier um eine reine Wärmewirkung und nicht um eine Lichtwirkung der Sonnenstrahlen handelt, ist ohne weiteres zu entscheiden, wenn man entweder die chemisch wirksamen Lichtstrahlen durch Zwischenschaltung einer absorbierenden Lösung von Jod in Schwefelkohlenstoff oder die Wärmestrahlen durch Einschaltung von Eis- und Alaunplatten ausschließt. Im ersteren Falle ist die thermotaktische Wirkung ebenso deutlich wie im reinen Sonnenlicht; im letzteren fehlt sie trotz der großen Helligkeit der Beleuchtung. Ueberhaupt sind die Amöben, wie sich bei genauerer Prüfung zeigt, nicht durch Licht reizbar. Dagegen zeigt eine thermometrische Messung der Temperatur im Tropfen direkt über dem Ausschnitt des schwarzen Papiers, daß mindestens eine Temperatur von 35° C erreicht sein muß, wenn die Wirkung eintreten soll.
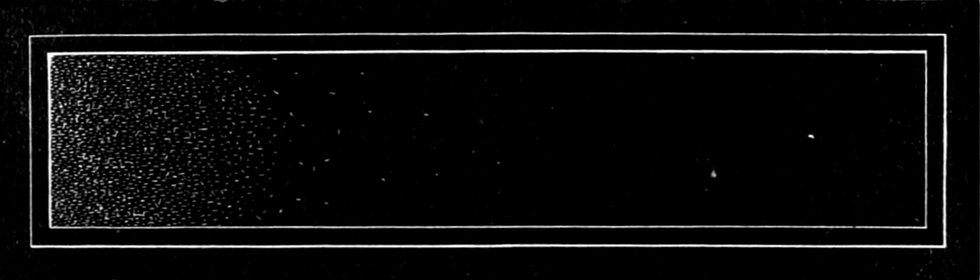
Fig. 246.
Thermotaxis von Paramaecium
. In einer schwarzen Ebonitwanne von 10 cm Länge befinden sich zahlreiche Paramäcien, die sich bei einseitiger Erwärmung der Wanne auf über 24–28° C alle nach der kühleren Seite hin bewegen. Nach M
ENDELSSOHN
.
Die thermotaktische Wirkung verschiedener Temperaturgrade läßt sich am besten an Wimperinfusorien studieren, die man, wie Paramaecium, in großen Massen züchten und zum Versuch benutzen kann. Bringt man auf eine Metallplatte eine kleine Ebonitwanne und breitet auf dieser die paramäcienhaltige Flüssigkeit aus, so kann man durch einseitiges Erwärmen oder Abkühlen mittels Eis an beiden Enden der Flüssigkeitsfläche thermometrisch meßbare Temperaturdifferenzen herbeiführen, die eine ausgeprägte thermotaktische Wirkung zur Folge haben (Fig. 246). Der unten abgebildete, von MENDELSSOHN konstruierte Apparat gestattet eine Heizung und Abkühlung mit heißem oder kühlem Wasser (Fig. 247). Mit dieser Methode hat MENDELSSOHN[527] in einer Reihe von Arbeiten die Thermotaxis von Paramaecium und später auch von verschiedenen anderen Infusorienformen eingehend studiert. Dabei hat sich gezeigt, daß die Paramäcien bei Temperaturen von mehr als ca. 25–28° C negativ thermotaktisch sind, d. h. von der wärmeren Seite in Scharen wegschwimmen, während sie bei Temperaturen unterhalb dieser Grenze positive Thermotaxis zu erkennen geben, indem sie die abgekühlte Seite verlassen. Wir haben also hier eine der Chemotaxis und Phototaxis, bei der die Organismen ebenfalls einem bestimmten Intensitätsgrade des Reizes sich von beiden Seiten her zuwenden, vollkommen analoge Reizwirkung. Wie geringe Temperaturdifferenzen an beiden Körperpolen des Paramaeciums übrigens noch eine thermotaktische Wirkung zu erzielen vermögen, ergibt sich aus einer einfachen Berechnung, wenn man die Länge der Flüssigkeitsfläche, die geringsten noch wirksamen Differenzen an ihren beiden Enden und die Länge des Paramäcienkörpers kennt. JENSEN fand bei dieser Berechnung, die freilich immer nur annähernde Werte ergeben kann, daß die Paramäcien noch thermotaktisch sind, wenn an den beiden Enden ihres ca. 0,2 mm langen Körpers ein Temperaturunterschied von 0,01° C herrscht. Es spricht sich darin eine Feinheit der Unterscheidung von Reizgrößen aus, die in den von PFEFFER für die Chemotaxis ermittelten Zahlen, sowie in den geringen bei der Phototaxis wirksamen Reizunterschieden zwar ein Analogon findet, die aber unsere bewußte Unterschiedsempfindlichkeit für Temperaturreize weit hinter sich zurückläßt.
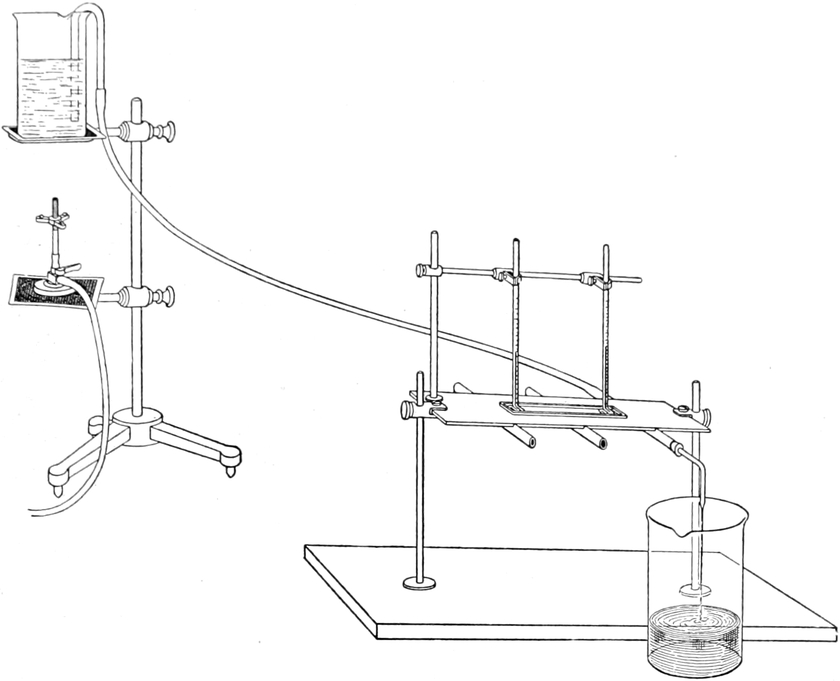
Fig. 247.
Apparat zur Untersuchung der Thermotaxis
. Auf einer Metallplatte befindet sich, in eine Vertiefung eingelassen, eine flache Wanne aus schwarzem Ebonit (
Fig. 246
), in der die paramäcienhaltige Flüssigkeit ist. Die Metallplatte besitzt 3 Röhren, durch die von einem Becherglase aus mittels eines Schlauches Wasser von beliebiger Temperatur hindurchgelassen werden kann. Ueber der Wanne sind an einem Stativ Thermometer angebracht, die in die paramäcienhaltige Flüssigkeit tauchen und es gestatten, die Temperatur, die hier an verschiedenen Stellen herrscht, jeden Augenblick abzulesen. Nach M
ENDELSSOHN
.
5. Galvanotaxis.
Es ist die charakteristische Eigenschaft des galvanischen Stromes, daß er stets polare Erregungswirkungen hervorruft. Infolgedessen ist die Reizung mit dem konstanten Strome wie die Lichtreizung von vornherein geeignet, bewegungsrichtende Reaktionen auszulösen. Da wir ferner den galvanischen Strom in feinster Weise in seiner Intensität abstufen und in seiner Richtung beherrschen können, so besitzen wir in ihm das vollkommenste Mittel, um bewegungsrichtende Reizwirkungen in ihrer exaktesten Form und mit der präzisen Sicherheit physikalischer Vorgänge experimentell zu erzeugen. In der Tat sind es denn auch die galvanotaktischen Reaktionen der freibeweglichen Organismen, welche am meisten an die Wirkungen des Magneten auf Eisenteilchen erinnern.
Die ersten galvanotaktischen Reizwirkungen an Tieren wurden von HERMANN[528] an Froschlarven und Fischembryonen entdeckt. Er machte die Beobachtung, daß diese Tiere, wenn durch das Gefäß, in dem sie sich befanden, ein galvanischer Strom geleitet wurde, sich sämtlich bei der Schließung des Stromes mit ihrer Längsachse in der Richtung der Stromkurven einstellen, und zwar so, daß sie mit dem Kopfe nach der Anode und mit dem Schwanze nach der Kathode gerichtet sind. In dieser Stellung verharren sie, ohne sich vom Flecke zu rühren. Die analogen Wirkungen sind dann in neuerer Zeit von NAGEL[529], BLASIUS und SCHWEIZER[530] und LOEB[531] an verschiedenen anderen, höheren Tierformen beobachtet worden.
Auch an Pflanzen sind galvanotaktische Reaktionen aufgefunden worden und zwar an den Wurzelspitzen mancher Pflanzen, die sich bei längerer Durchströmung mit dem konstanten Strome nach der Kathode hin krümmen.
Am frappierendsten aber und theoretisch am interessantesten sind die galvanotaktischen Reizwirkungen bei den freilebenden einzelligen Organismen, wie Rhizopoden, Leukocyten, Infusorien etc.[532].
Um die Galvanotaxis dieser Organismen zu untersuchen, bedienen wir uns am besten wieder des oben beschriebenen Objektträgers mit den unpolarisierbaren Tonleistenelektroden oder auch unpolarisierbarer Elektroden, die den Pinselelektroden analog eingerichtet sind, aber statt der Pinsel Spitzen aus gebranntem Ton tragen, die in die zu durchströmende Flüssigkeit eingetaucht werden können (Fig. 248).
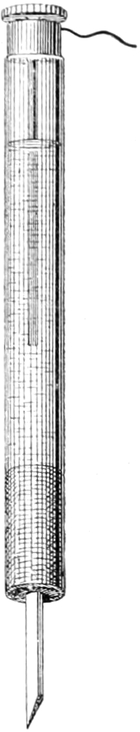
Fig. 248.
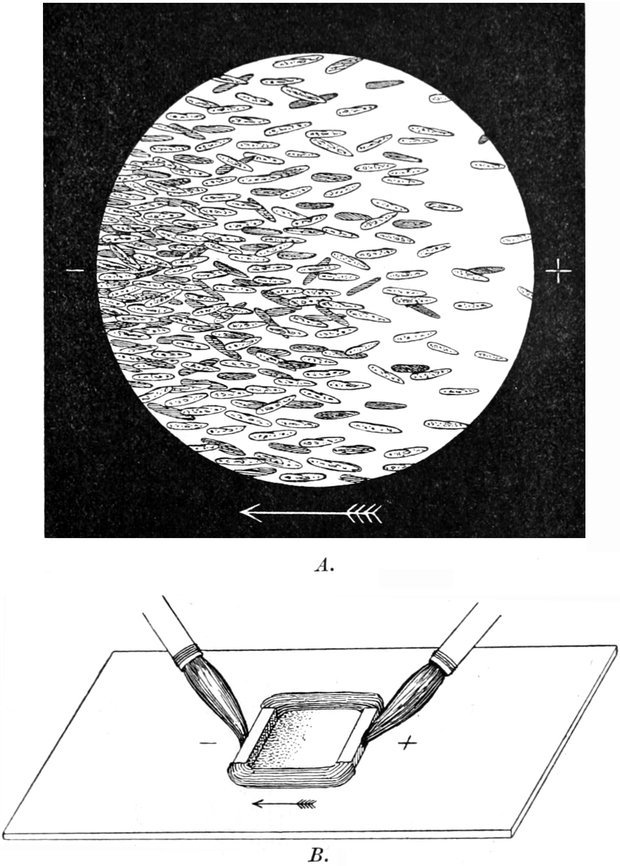
Fig. 249.
Fig. 248. Unpolarisierbare Elektrode, die statt des Pinsels eine Spitze aus gebranntem Ton trägt.
Fig. 249. Galvanotaxis von Paramäcien. Der Pfeil gibt die Schwimmrichtung der Paramäcien an, die sich in B bereits alle an der kathodischen Elektrodenleiste angesammelt haben. A Mikroskopisches Bild, B makroskopisches Bild.
Bringt man zwischen die parallelen Elektrodenleisten des Objektträgers (Fig. 249 B) einige Tropfen Wasser, in dem sich viele Paramäcien befinden, und läßt man dann aus zwei an die Tonleisten angelegten Pinselelektroden einen konstanten Strom durch die Flüssigkeit gehen, so stellen sich im Moment der Schließung alle Paramäcien mit dem vorderen Körperpol nach der Kathode hin ein und schwimmen in dichter Schar auf dieselbe los (Fig. 249 A). In wenigen Sekunden ist die Anode vollkommen von ihnen verlassen, und an der Kathode befindet sich ein dichtes Gewimmel, das bestehen bleibt, solange der Strom geschlossen ist. Wendet man jetzt den Strom in die entgegengesetzte Richtung, so daß zur Kathode wird, was vorher Anode war, und umgekehrt, so rückt die ganze Schar in einheitlichem Haufen wieder nach der gegenüberliegenden Seite hinüber und bildet, wie vorher, eine Ansammlung an der neuen Kathode. Man kann dieses Experiment, das durch die große Exaktheit der Reaktion jeden Beschauer im höchsten Maße fesselt, beliebig oft wiederholen. Oeffnet man den Strom schließlich, so zerstreut sich die Ansammlung von der Kathode her, und die Paramäcien verteilen sich wieder gleichmäßig in der ganzen Flüssigkeit. Tut man die Paramäcien in einem großen Tropfen auf eine Glasplatte, und taucht man in den Tropfen die Spitzenelektroden ein, so stellen sich die Paramäcien bei Schließung des Stromes wie die Eisenfeilspäne über einem Magneten in die Richtung der Stromkurven ein und schwimmen in dieser Richtung (Fig. 250), bis sie die Kathode erreicht haben, hinter der sie sich in dichter Schar anhäufen. Macht man die kathodische Elektrode beweglich, so daß man ihre Lage im Tropfen beliebig verändern kann, so gelingt es, die Paramäcien mit der Elektrodenspitze wie blecherne Fische im Wasser mit dem Magneten zu dirigieren, wohin man sie haben will. Da die Bewegung der Paramäcien auf die Kathode hin gerichtet ist, kann man diesen Fall als kathodische Galvanotaxis bezeichnen.
Wie Paramaecium ist die Mehrzahl aller Wimperinfusorien kathodisch-galvanotaktisch. Unter den anderen Protisten, die noch das gleiche Verhalten zeigen, mögen nur noch die Amöben genannt sein. Amoeba limax beginnt, wenn der Strom geschlossen wird, sofort nach der Kathode hin zu kriechen, indem sie ihre ursprüngliche Kriechrichtung aufgibt und ein Pseudopodium nach der Kathode zu vorfließen läßt, in das die ganze Protoplasmamasse nachströmt, bis der Körper wieder die typische langgestreckte Kriechform hat, in der er stetig der Kathode zufließt. Ganz ebenso verhalten sich auch andere Amöbenformen, wie Amoeba proteus (Fig. 251), Amoeba verrucosa und Amoeba diffluens (Fig. 252).
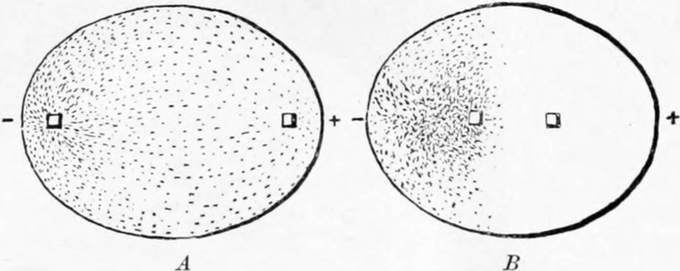
Fig. 250.
Galvanotaktische Schwimmkurven von Paramaecium bei Anwendung von spitzen Elektroden im Wassertropfen
.
A
Beginn des Schwimmens,
B
vollendete Ansammlung.
Das entgegengesetzte Verhalten wie die eben genannten Organismen zeigen viele Geißelinfusorien. Lassen wir z. B. einen konstanten Strom durch einen Tropfen gehen, in dem sich eine größere Menge von Individuen der kleinen, eiförmigen Polytoma uvella befindet, die mit ihren zwei Geißeln (Fig. 253) sich unter beständigen Achsendrehungen durch das Wasser bewegen, so drehen sich bei Schließung des Stromes sofort alle Individuen mit ihrem vorderen, geißeltragenden Ende nach der Anode zu und schwimmen in ihrer gewöhnlichen Bewegungsweise gerade auf diesen Pol los, wo sie sich in dichten Scharen sammeln. Nach der Oeffnung des Stromes verteilen sie sich wieder gleichmäßig im ganzen Tropfen. Polytoma verhält sich also den beiden Elektroden gegenüber genau umgekehrt wie Paramaecium; sie ist im Gegensatz zu diesem anodisch galvanotaktisch.
Einen sehr fesselnden Anblick hat man, wenn man in einer Flüssigkeit anodisch galvanotaktische Infusorien, etwa eine Flagellatenform, wie Polytoma, und kathodisch-galvanotaktische, etwa eine kleine Ciliatengattung, wie Halteria oder Pleuronema, zusammen der Einwirkung des Stromes aussetzt. Das vorher unentwirrbare Durcheinanderwimmeln der beiden Infusorienformen löst sich sofort nach der Schließung des Stromes. Die Ciliaten sammeln sich an der Kathode, die Flagellaten an der Anode. Die Mitte der Flüssigkeit ist nach kurzer Zeit vollständig frei, und die beiden Haufen sind scharf voneinander geschieden. Wendet man jetzt den Strom, so daß die bisherige Anode zur Kathode wird und umgekehrt, so rücken die beiden Infusorienhaufen wie zwei feindliche Heere aufeinander los, kreuzen sich und sammeln sich an den entgegengesetzten Polen von neuem wieder an. Es gibt wenige physiologische Experimente, die so anmutig und zierlich sind, wie der galvanotaktische Reigen der Infusorien.
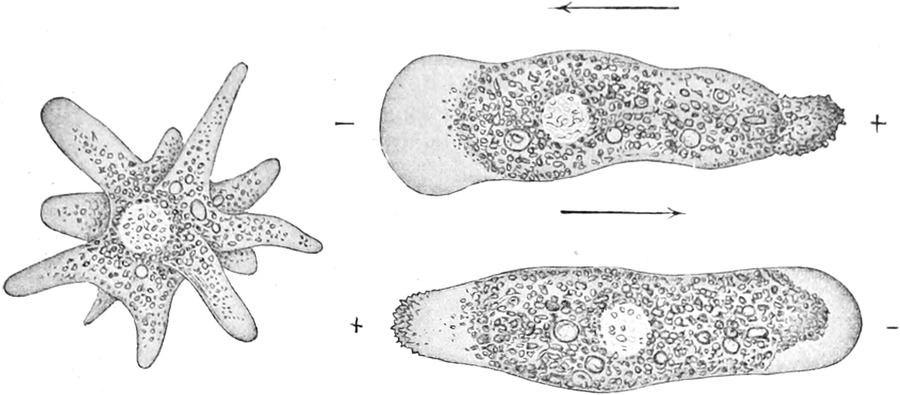
Fig. 251.
Galvanotaxis von Amoeba proteus
. Links Amoeba proteus ungereizt mit zahlreichen Pseudopodien. Rechts (oben) nach Schließung des Stromes und (unten) nach Wendung des geschlossenen Stromes. Die Pfeile geben die Kriechrichtung an.
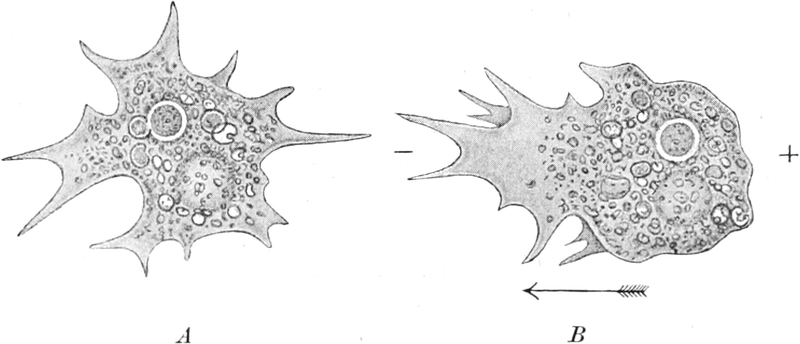
Fig. 252.
Galvanotaxis von Amoeba diffluens
.
A
Amoeba diffluens ungereizt kriechend,
B
nach Schließung des konstanten Stromes. Der Pfeil gibt die Kriechrichtung an.
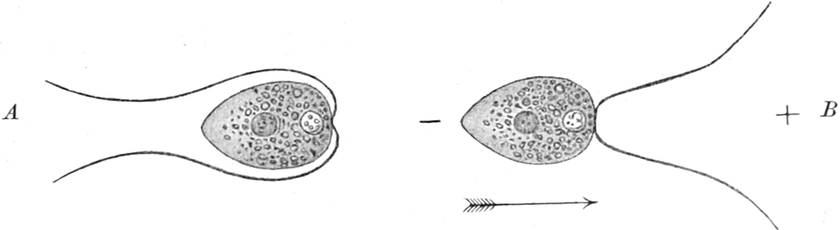
Fig. 253.
Galvanotaxis von Polytoma uvella
.
A
Polytoma uvella ruhig liegend,
B
nach Schließung des konstanten Stromes zur Anode schwimmend.
Ein sehr merkwürdiges Verhalten gegenüber dem galvanischen Strome zeigt das Wimperinfusorium Spirostomum ambiguum[533]. Wenn man diese langgestreckten Infusorien, die mit bloßem Auge bereits als kleine, ca. 2 mm lange, weiße Fädchen wahrgenommen werden können, in ihrem Wasser zwischen die parallelen Tonleistenelektroden bringt, so bemerkt man, daß sie bei Schließung des konstanten Stromes durch die plötzliche Kontraktion ihrer Myoidfäden zusammenzucken, aber nicht, wie man etwa erwarten könnte, nach dem einen oder anderen Pole hinschwimmen. Statt dessen drehen sie sich unter mehrfachen Körperbiegungen durch ihre Wimperbewegung allmählich so, daß sie mit ihrer Längsachse senkrecht zur Richtung des Stromes eingestellt sind, eine Richtung, die sie, wenn auch unter wiederholten Biegungen und Knickungen des langen Körpers, dauernd beibehalten (Fig. 254).
Fig. 254.
Galvanotaxis von Spirostomum ambiguum
. Die Infusorien haben sich nach Schließung des Stromes mit ihrer Längsachse senkrecht zur Stromesrichtung eingestellt.
Ein ähnliches Verhalten, aber noch auffallender, bringen gewisse hypotriche Infusorien zum Ausdruck, wie Oxytricha und Stylonychia. Diese Protisten, die in ungestörtem Zustande mit ihren Bauchwimpern auf dem Grunde oder am Oberflächenhäutchen des Wassers umherlaufen, stellen sich bei Schließung des konstanten Stromes sämtlich mit einem Ruck quer zur Richtung des Stromes ein und zwar so, daß ihre Peristomseite der Kathode zugewendet ist. In dieser Einstellung laufen sie vorwärts. Diejenigen Individuen aber, die frei im Wasser schwimmen, zeigen die gewöhnliche Form der kathodischen Galvanotaxis. Geht ein transversal zur Stromesrichtung laufendes Individuum einmal zum freien Schwimmen über, was bei stärkeren Strömen öfters vorkommt, so schwimmt es in der typischen Weise unter Achsendrehungen direkt nach der Kathode, geht aber ein kathodisch galvanotaktisches Individuum zum thigmotaktischen Laufen über, so stellt es sich sofort quer zur Stromesrichtung, so daß es die Kathode zu seiner Linken hat. Da in jedem Reizkästchen immer drei Gruppen von Individuen zu unterscheiden sind, von denen die einen mit der Bauchseite nach unten an der Unterlage, die anderen mit der Bauchseite nach oben am Oberflächenhäutchen laufen, während die dritten frei in der Mitte der Flüssigkeit schwimmen, so sieht man auch bei schwacher Vergrößerung gleichzeitig drei verschiedene Bewegungsrichtungen: die erste Gruppe läuft quer zum Strom nach einer einzigen Richtung, die zweite läuft quer zum Strom nach entgegengesetzter Richtung, und die dritte schwimmt nach der Kathode. Diese Bewegungen und Einstellungen erfolgen momentan wie auf Kommando, sobald der Strom geschlossen wird, und hören sofort wieder auf nach der Oeffnung. Wie PÜTTER[534] gezeigt hat, ist diese eigentümliche transversale Galvanotaxis bei den hypotrichen Infusorien nur eine Interferenzwirkung der Galvanotaxis mit der Thigmotaxis und kommt dadurch zustande, daß gewisse Wimpergruppen, die für die Ortsbewegung wichtig sind, durch den Kontaktreiz in bestimmter Weise beeinflußt werden.
Eingehende Analysen des Verhaltens der Wimpern bei der Galvanotaxis der Infusorien und des Mechanismus, der zur anodischen, kathodischen und transversalen Galvanotaxis führt, haben LUDLOFF, PÜTTER, JENNINGS und WALLENGREN ausgeführt. Dabei hat sich aus den Untersuchungen von WALLENGREN[535] namentlich an Opalina und Spirostomum ergeben, daß die gleiche Lokalisation der polaren Erregung je nach der Intensität des Stromes durch verschieden starke Beeinflussung dieser oder jener Wimpergruppen zu verschiedenen Formen der Galvanotaxis, d. h. entweder zu einer anodischen oder kathodischen oder transversalen Einstellung führen kann. Die tiefgehenden Untersuchungen von WALLENGREN und JENNINGS über diese sehr komplizierten Verhältnisse lassen sich indessen hier leider nicht in Kürze anschaulich wiedergeben. Sie haben uns aber bis zu einem erstaunlichen Grade über die feinsten Einzelheiten des Mechanismus der Galvanotaxis aufgeklärt.
Es darf schließlich nicht unerwähnt bleiben, daß man bisweilen den sehr naheliegenden Gedanken ausgesprochen hat, die galvanotaktischen Reaktionen an mikroskopischen Objekten möchten mit den rein passiven kataphorischen Wirkungen identisch sein, welche sehr starke galvanische Ströme an kleinen in der Flüssigkeit leicht beweglich suspendierten Teilchen hervorrufen. Bei derartigen Objekten, wie Karminteilchen, Lycopodiumsamen, Stärkekörnchen etc. kann man, wie BIRUKOFF[536] wieder eingehend studiert hat, in der Tat ganz bestimmt gerichtete Wanderungen und Ansammlungen als Wirkungen starker Ströme beobachten. Indessen diese Bewegungen haben nur eine rein äußerliche Aehnlichkeit mit den galvanotaktischen Wanderungen der einzelligen Organismen. Die Tatsachen der anodischen und transversalen Galvanotaxis oder das gleichzeitige Eintreten der kathodischen und anodischen Galvanotaxis verschiedener Infusorienarten allein schon wären auf Grund dieser Analogie schlechterdings vollkommen unverständlich. Endlich wissen wir auch, daß die Galvanotaxis sofort aufhört, sobald die Infusorien narkotisiert oder abgetötet sind. Alles das und noch zahlreiche andere Momente verbieten es, die Galvanotaxis einfach auf die kataphorischen Wirkungen des Stromes zu beziehen. Die Galvanotaxis reiht sich vielmehr als echte Reizwirkung den bewegungsrichtenden Wirkungen der anderen Reizqualitäten unmittelbar an und folgt denselben Gesetzen und Bedingungen wie diese. Welcher spezielle Faktor in dem Komplex von Bedingungen, den wir als galvanischen Strom bezeichnen, die charakteristischen Erregungen und Hemmungen der Wimpertätigkeit hervorruft, deren Ausdruck die galvanotaktische Achseneinstellung und Schwimmbewegung der Infusorienzelle ist, diese Frage müssen wir, wie bereits oben[537] bemerkt, vorläufig offen lassen. COEHN und BARRATT[538] haben kürzlich die Hypothese geäußert, daß es sich hier primär um eine elektrische Ladung der Organismen handle, die aus der verschiedenen Durchlässigkeit der lebendigen Protoplasmamembran für die beiden Ionenarten von Elektrolyten resultiere. Indessen bleibt auch bei dieser Hypothese noch immer die spezifische Beeinflussung der Wimperbewegung unerklärt. Eine genauere Analyse des Reaktionsmechanismus der galvanotaktischen Reizwirkungen, soweit dieser in der lebendigen Substanz abläuft, wird immer nur mit den gleichen Prinzipien rechnen können, die bei den analogen Reizwirkungen aus dem Gebiete anderer Reizqualitäten die Reaktion beherrschen, d. h. in erster Linie mit den allgemeinen Wirkungen der Reize auf das Geschehen in der lebendigen Substanz.
C. Die Wirkungen der Ueberreizung.
Als das kleine Häuflein tapferer Athener unter der Führung des MILTIADES den glänzenden Sieg bei Marathon erfochten hatte, eilte, noch warm vom Kampfe, einer der Streiter vom Schlachtfelde nach Athen, um der erste zu sein, der seinen Landsleuten die Kunde des Sieges überbrachte. Das dramatische Geschick dieses Läufers von Marathon erzählt PLUTARCH[539], der uns die Anekdote überliefert hat. Als EUKLES — so war der Name des patriotischen Mannes — von der Anstrengung des langen Laufes erschöpft, in Athen eintraf, hatte er eben noch die Kraft, um seinen Landsleuten mit den Worten: „χαίρετε χαίρομεν!“ die Siegesbotschaft zuzurufen, worauf er tot zusammenbrach. Einer unserer modernen Bildhauer, MAX KRUSE, hat diese Erzählung durch seine in der Nationalgallerie zu Berlin befindliche Darstellung des Läufers von Marathon in künstlerischer Weise versinnlicht und den physiologischen Wirkungen totaler Ermüdung an diesem klassischen Zeugen einen ergreifenden Ausdruck verliehen.
Was das tragische Ende des EUKLES herbeiführte, war die übermäßige Anstrengung seiner Muskeln. Es treten nämlich unter dem Einfluß langer Dauer oder hoher Intensität der einwirkenden Reize in der lebendigen Substanz allmählich Veränderungen ein, die, wenn sie einen gewissen Grad erreicht haben, schließlich zum Tode führen. Auf diese, infolge von Ueberreizung sich entwickelnden Veränderungen wollen wir im folgenden etwas ausführlicher eingehen.
1. Ermüdung und Erschöpfung.
Wird ein lebendiges Objekt entweder durch lange andauernde oder durch oft wiederholte oder auch durch sehr starke Reize erregt, so gerät es infolge der übermäßigen Arbeit nach einiger Zeit in den Zustand der Lähmung, die gewöhnlich als Ermüdung und Erschöpfung bezeichnet wird und die wir auch mit einem einheitlichen Ausdruck als „Arbeitslähmung“ bezeichnen können. Das äußerliche Symptom der Arbeitslähmung zeigt sich allgemein darin, daß der Reizerfolg, d. h. die geleistete Arbeit bei fortdauernder Reizung mit gleichbleibender Reizintensität immer geringer wird.
Einige Beispiele für diese Tatsache lernten wir bereits bei Betrachtung der galvanischen Reizung[540] kennen. Lassen wir einen konstanten galvanischen Strom von mittlerer Stärke durch ein Actinosphaerium fließen, so beginnen im Moment der Schließung an der Anode starke Kontraktionsbewegungen aufzutreten. Das Protoplasma der Pseudopodien fließt zentripetal, bis die Pseudopodien eingezogen sind; dann zerplatzen die Wände der Vakuolen, und es erfolgt ein körniger Zerfall des Protoplasmas, der von der Kathode her während der Dauer des Stromes immer weiter vorrückt. Allein dieser Zerfall, der zuerst mit großer Energie begann, wird, je länger der Strom schon hindurchfließt, um so langsamer und geringer, bis er nach einiger Zeit ganz still steht. Die lebendige Substanz des Actinosphaeriums nimmt also im Laufe der andauernden Reizung an Erregbarkeit ab, so daß der anfangs heftige Kontraktion hervorrufende Reiz schließlich gar keinen Reizerfolg mehr hat. Noch viel schneller als Actinosphaerium wird Pelomyxa gelähmt. Eine Reizdauer von wenigen Sekunden genügt, um die Pelomyxa für Ströme gleicher Intensität vollständig unerregbar zu machen, so daß es viel höherer Reizintensität bedarf, um wieder den gleichen Reizerfolg zu erzielen wie anfangs.
Gegenüber diesen sehr schnell ermüdenden Formen der lebendigen Substanz haben wir in den Nervenfasern eine Form der lebendigen Substanz, die unter physiologischen Bedingungen im intakten Zusammenhange des Körpers überhaupt nicht ermüdet und nur außerhalb des Körpers unter ganz bestimmten, experimentell hergestellten Bedingungen künstlich ermüdet werden kann. Die Nervenfaser galt bis vor wenigen Jahren überhaupt für unermüdbar. So schwer sich auch die Physiologie zu dieser Auffassung entschloß, so zweifellos war es doch andererseits, daß alle Versuche, die seit langer Zeit unternommen wurden, um die Nervenfaser zu ermüden, einen negativen Erfolg hatten. Erst vor kurzem sind die Faktoren bekannt geworden, die diese scheinbare Unermüdbarkeit des Nerven bedingen und gleichzeitig konnten dann die Bedingungen experimentell hergestellt werden, unter denen eine Ermüdung des Nerven zu erzielen ist. Ein anderes Organ in unserem Körper, das ebenfalls nicht zu ermüden scheint, obwohl es andauernd arbeitet, ist das Herz. Hier ist aber bereits seit längerer Zeit bekannt, daß die durch jede Kontraktion erzeugten Veränderungen des Herzmuskels immer wieder sogleich durch den Stoffwechsel ausgeglichen werden, so daß sich unter normalen Verhältnissen keine Ermüdung entwickeln kann, obwohl das Herz von lange vor der Geburt an bis zum Tode rastlos tätig ist. Dennoch ist der Herzmuskel ermüdbar, wenn er aus irgendeinem Grunde angestrengter arbeiten muß, als es normalerweise geschieht. Das ist z. B. bei andauernd übermäßiger Anstrengung und bei gewissen Krankheiten der Fall. Zwar machen sich häufig die Ermüdungssymptome nicht sofort, wohl aber im Laufe längerer Zeiträume bemerkbar, und selbst die Substanz des Herzmuskels verändert sich in tiefgehender Weise, bis er seine Bewegungen ganz einstellt. Dann erfolgt der Tod durch Herzlähmung.
Ein besonders günstiges Objekt, um die Entwicklung der Arbeitslähmung zu studieren, bilden die Skelettmuskeln und die Ganglienzellen des Zentralnervensystems. Die Ermüdung ist daher auch an diesen beiden Geweben des Wirbeltierkörpers am eingehendsten studiert worden.
Fig. 255.
Ergograph von M
OSSO
. Nach M
OSSO
.
Wenden wir uns zunächst den Erfahrungen am Muskel zu. Da man die Muskelbewegung mittels der graphischen Methode in exakter Weise verzeichnen und in ihren einzelnen Momenten anschaulich machen kann, so kann man die fortschreitende Ermüdung eines Muskels sehr bequem an der Veränderung der Muskelkurve verfolgen, die der zuckende Muskel aufzeichnet. MOSSO[541] hat dies am lebenden Menschen mittels seines Ergographen getan und die Ergebnisse in seinem vortrefflichen und fesselnden Buche über „Die Ermüdung“ mitgeteilt. Der Ergograph ist ein Apparat, in dem der Arm eines Menschen mittels eines Armhalters befestigt wird, während ein Finger sich frei bewegen kann. Dieser Finger steht durch einen Faden mit einem Schreibhebel in Verbindung, der alle willkürlich oder auf elektrische Reizung unwillkürlich erfolgenden Bewegungen des Fingers auf einer in Rotation begriffenen schwarzen Trommel verzeichnet. An den Faden kann ferner ein Gewicht gehängt und dadurch die Arbeitsleistung der Fingerbeugemuskeln beliebig verändert werden (Fig. 255). Mittels dieses Apparates kann man sich in anschaulichster Weise davon überzeugen, daß bei rhythmischer Erregung des Muskels durch Willensimpulse, die in gleichmäßigen Zwischenräumen aufeinanderfolgen, die Arbeitsleistung der Muskeln immer mehr abnimmt und schließlich gleich 0 wird. Das kommt an der Zuckungskurve, die nur die Größe der Kontraktion angibt, in der beständigen Abnahme der Hubhöhe zum Ausdruck (Fig. 256). Es würde bedeutend stärkerer Reizung bedürfen, um nach Ablauf der einen Versuchsreihe wieder gleich hohe Zuckungen der ermüdeten Muskeln zu erzielen, wie anfangs.
Die Einzelheiten der Veränderungen werden aber besser sichtbar, wenn man, wie dies MAREY[542] schon vor längerer Zeit getan hat, an einem Myographion Zuckungskurven eines Froschschenkels vom Anfang der Versuchsreihe an immer von dem gleichen Fußpunkte aus übereinander aufzeichnet. Dann stellt sich heraus, daß, wie HELMHOLTZ bereits fand, mit zunehmender Ermüdung nicht nur die Zuckungshöhe abnimmt, sondern der Verlauf der Kurve auch gestreckter wird, wobei besonders der absteigende Schenkel der Kurve eine Verlängerung erfährt.
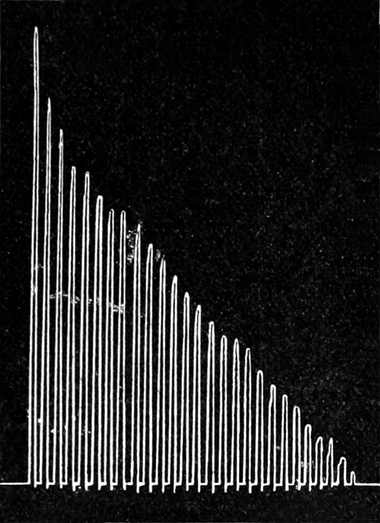
Fig. 256.
Ermüdungskurve
. Abnahme der Kurvenhöhe bei zahlreichen hintereinanderfolgenden Kontraktionen der Fingerbeugemuskeln. Nach M
OSSO
.
Vielleicht noch übersichtlicher wird das Bild von den Veränderungen, welche die Muskelzuckung mit zunehmender Ermüdung erfährt, wenn man die Zuckungskurven eines herausgeschnittenen Froschmuskels, die durch rhythmische Reizung mit immer gleichbleibender Reizstärke gewonnen werden, hintereinander in fortlaufender Reihe auf einer rotierenden Trommel graphisch verzeichnet (Fig. 257). Dabei erkennt man aufs deutlichste die folgenden Einzelheiten: Zunächst nimmt die Höhe der Zuckungen ganz allmählich mehr und mehr zu, es entwickelt sich die sogenannte „Treppe“. Diese „Treppe“ macht auf den ersten Blick den Eindruck, als wenn der Muskel in der ersten Zeit seiner rhythmischen Arbeitsleistung an Leistungsfähigkeit zunähme, da seine Zuckungen höher werden. Diese Zunahme der Leistungsfähigkeit ist aber nur eine scheinbare, wie FRÖHLICH[543] gezeigt hat, und stellt in erster Linie nichts anderes als ein erstes Lähmungssymptom dar, das daraus resultiert, daß die Wiederstreckung der Muskelsubstanz mit jeder folgenden Kontraktion etwas langsamer verläuft, so daß eine immer längere Muskelstrecke gleichzeitig in Kontraktion sich befindet[544]. Sodann macht sich die Verlangsamung der Wiedererschlaffung, d. h. der Expansionsphase, also die Verzögerung des absteigenden Schenkels der Zuckungskurve immer deutlicher bemerkbar, darin, daß dieser absteigende Schenkel immer langsamer auf seinen Fußpunkt zurückkehrt, so daß die folgende Zuckung bereits erfolgt, ehe der Muskel sich wieder vollständig gestreckt hat. Dadurch entwickelt sich einerseits ein dauernder Verkürzungsrückstand, die sogenannte „Kontraktur“, anderseits werden die Höhen der Einzelzuckungen immer niedriger, weil sich die Einzelzuckungen von einem immer höher rückenden Niveau aus erheben. Schließlich führt der Muskel nur noch ganz schwache Zuckungen aus und bei fortdauernder Reizung kann man es erreichen, daß er überhaupt nicht mehr zuckt. Unterbricht man dann die Reizung (Fig. 257 e), so sinkt die Kurve ganz allmählich mehr und mehr ab, d. h. die Kontraktur läßt nach. Beginnt man dann die Reizung von neuem, so sind die ersten Zuckungen wieder etwas höher. Der Muskel hat sich ein wenig erholt. Sehr schnell aber entwickelt sich jetzt die Kontraktur von neuem und die Zuckungen werden wieder kleiner (Fig. 257 f). Der Muskel ermüdet jetzt viel schneller als anfangs und zwar um so schneller, je öfter man die Reizung von neuem einsetzen läßt.
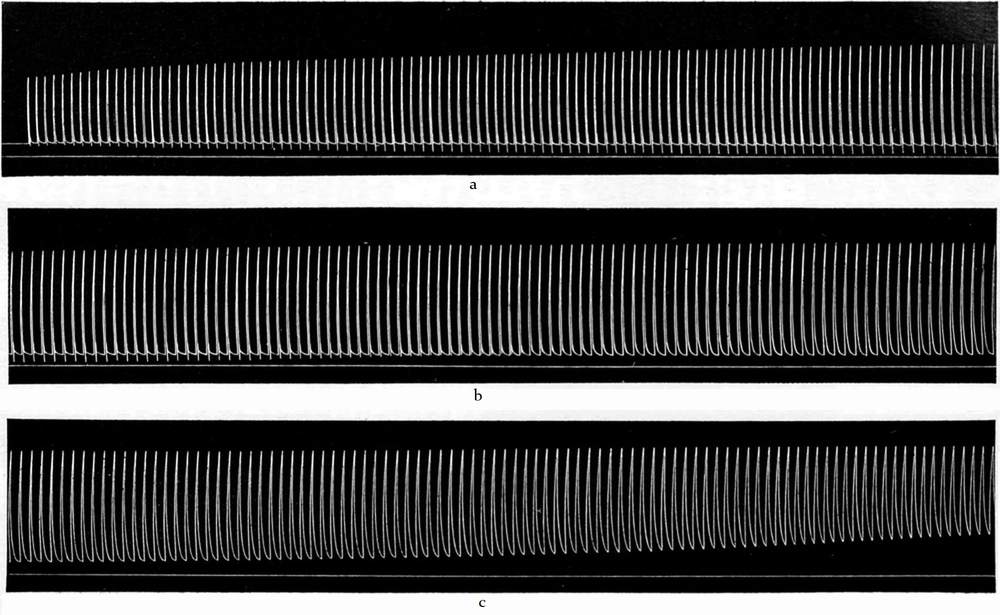
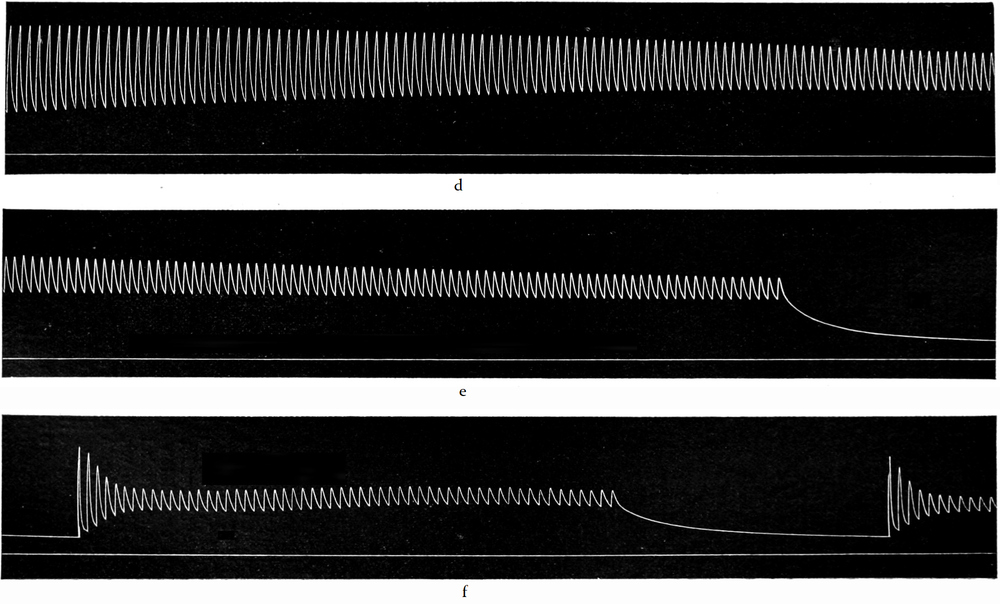
Fig. 257.
Kurve der Arbeitslähmung des isolierten Froschmuskels durch rhythmische Reizung mit Induktionsöffnungsschlägen
(in 6 Teile zerschnitten). Bei
a
und
b
ist die allmähliche Entwicklung der „
Treppe
“ deutlich zu sehen. Bei
c
und
d
entwickelt sich die „
Kontraktur
“. Bei
e
sind die Zuckungen schon sehr klein geworden, die Reizung wird unterbrochen, der Muskel erholt sich ein wenig. Bei
f
Wiederbeginn der Reizungen. Die Ermüdung erfolgt jetzt sehr schnell. Nach erneuter Unterbrechung der Reizung wird ein drittes Mal mit den Reizungen begonnen.
Ebenso wie bei der Einwirkung einzelner Induktionsschläge, nur viel schneller, treten die Ermüdungssymptome hervor bei Reizung mit dem tetanisierenden Strom. Zeichnet man auf einer rotierenden Trommel die Tetanuskurve eines nicht zu kräftigen, mit einem ziemlich schweren Gewicht belasteten Wadenmuskels vom Frosch auf, so sieht man, wie die Kurve nur sehr kurze Zeit auf ihrer anfänglichen Höhe bleibt. Sehr bald schon beginnt sie langsam mehr und mehr zu sinken. Unterbricht man dann die Reizung, so fällt die Kurve meist nicht bis auf das Niveau ihres Ausgangspunktes herab, sondern bleibt eine Strecke über demselben und kehrt erst im Laufe längerer Zeit wieder zu ihrem Ausgangsniveau zurück. Es bleibt also ein ziemlich großer „Verkürzungsrückstand“ nach Beendigung der Reizung am ermüdeten Muskel zurück, und nur ganz langsam nimmt der ermüdete Muskel seine ursprüngliche Länge wieder an.
Fig. 258.
Tetanuskurve eines ermüdeten Froschmuskels
.
Ziehen wir aus allen diesen Tatsachen das Fazit, so müssen wir sagen: Die Arbeitsleistung des Muskels wird mit zunehmender Ermüdung immer geringer, während die Dauer der einzelnen Zuckung zunimmt. Die letztere Tatsache beruht im wesentlichen auf einer zunehmenden Dauer der Expansionsphase. Der ermüdete Muskel braucht nach einer Zuckung unvergleichlich mehr Zeit um sich wieder zu strecken, als der frische Muskel.
Es ist von Interesse, daß man entsprechend diesen funktionellen Veränderungen auch mikroskopische Veränderungen am ermüdeten Muskel beobachtet hat. H. M. BERNARD[545] hat von einer Anzahl vollständig gleicher blauer Schmeißfliegen (Musca vomitoria) einige durch unausgesetzes Hetzen in fortwährender Bewegung erhalten, bis sie vollständig ermüdet zu Boden fielen. Die ermüdeten Fliegen wurden sofort und gleichzeitig mit dem anderen Teil, der inzwischen in völliger Ruhe geblieben war, getötet. Beide Teile wurden dann der gleichen Behandlung unterworfen. Dabei ergab sich ein durchgreifender Unterschied zwischen beiden. Während bei den ausgeruhten Fliegen die Muskelfibrillen deutliche Querstreifung und Unterschiede der Streifen im Tinktionsvermögen zeigten, waren bei den ermüdeten Fliegen nur eben noch die Zwischenscheiben der einzelnen Muskelsegmente deutlich zu sehen; der ganze Inhalt des einzelnen Segments färbte sich gleichmäßig hell, ohne die Differenzierung der Schichten merken zu lassen (Fig. 259). Besonders waren ferner die im Sarkoplasma zwischen den einzelnen Fibrillen liegenden Körnchen oder „Sarkosomen“ im ermüdeten Muskel gegenüber dem ausgeruhten ganz enorm vergrößert. Es würde aber zu weit führen, hier auf die Deutung dieser Veränderungen näher einzugehen.
Es fragt sich nun, was bei der Arbeitslähmung im Muskel vorgeht. Einen wichtigen Einblick in diese Vorgänge gewinnen wir zunächst, wenn wir uns von den äußerlich am Muskel selbst wahrnehmbaren Veränderungen zu den Symptomen wenden, die sich sekundär als Folgen sehr großer Muskelanstrengungen im Körper entwickeln. Wir finden hier einige Tatsachen, die uns in der Kenntnis der Ermüdung um einen Schritt weiter bringen.
Fig. 259.
Flugmuskeln von der Schmeißfliege (Musca vomitoria)
.
A
in der Ruhe,
B
in der Ermüdung. Die Schichtung der Muskelsegmente ist unsichtbar geworden, und die Sarkosomen zwischen den Fibrillen sind enorm vergrößert. Nach H. M. B
ERNARD
.
Ueberblicken wir den Symptomenkomplex, der sich im Laufe starker Muskelanstrengungen an unserem Körper entwickelt, so bemerken wir zunächst eine bedeutende Beschleunigung und Vertiefung der Atmung. Gleichzeitig wird die Frequenz des Herzschlags gesteigert. Die durch die Muskeltätigkeit erhöhte Wärmeproduktion wird auf reflektorischem Wege durch Ausbruch starken Schweißes, dessen Verdunstung die Temperatur herabsetzt, im wesentlichen kompensiert. Ist die Muskeltätigkeit eine sehr angestrengte gewesen, so tritt aber, besonders wenn der Körper vorher lange Zeit keine Muskelanstrengungen durchgemacht hatte, nicht selten im Gefolge der Anstrengung auch ein leichtes Fieber ein. Die Temperatur steigt, Anfälle von Schüttelfrost treten auf, und es macht sich eine gewisse Erregbarkeitssteigerung des Zentralnervensystems bemerkbar. Diese Tatsache ist so bekannt, daß man sogar von einem „Turnfieber“ oder „Reitfieber“ spricht, das nach allzu starken Anstrengungen beim Turnen oder Reiten eintritt. Auch nach sehr ermüdenden Gebirgstouren und nach langen Ritten wird dieses Ermüdungsfieber nicht selten beobachtet. Unter den subjektiven Symptomen, die sich im Gefolge sehr starker Muskelanstrengung einstellen, sind die bekanntesten die während des Fieberstadiums, z. B. am Abend nach einem anstrengenden Marsch, eintretende Aufregung, Schlaflosigkeit, Appetitlosigkeit und ferner die meist erst am nächsten Tage oder noch später sich einstellenden starken Muskelschmerzen.
Faßt man diese Momente alle zusammen, so erhält man einen interessanten Symptomenkomplex, der den Arzt auf das lebhafteste an das Krankheitsbild akuter Infektionskrankheiten erinnern muß. Die Vermutung liegt daher nahe, daß dieses ganze im Gefolge der Muskelermüdung auftretende Symptomenbild auch auf ähnliche Weise zustande kommt wie der charakteristische Symptomenkomplex der Infektionskrankheiten. Von letzterem wissen wir durch die neueren Forschungen auf dem Gebiete der Bakteriologie, daß er die Folge einer Vergiftung vorstellt, die durch gewisse von den eingewanderten Bakterien ausgeschiedene giftige Stoffwechselprodukte, die sogenannten Toxine[546], hervorgerufen wird. Es ist daher nicht ungerechtfertigt, anzunehmen, daß auch die Muskeln bei angestrengter Muskeltätigkeit in ihrem Stoffwechsel solche Toxine produzieren, die wirkliche Vergiftungssymptome erzeugen, sobald sie sich in größerer Menge im Körper anhäufen. Daß diese Vermutung in der Tat richtig ist, haben denn auch verschiedene Versuche direkt bewiesen.
Die ersten wichtigen Versuche waren die von RANKE[547], der fand, daß er einen ermüdeten Muskel wieder leistungsfähig machen konnte, wenn er ihn mit einer physiologischen Kochsalzlösung, die bekanntlich indifferent für lebendige Gewebe ist, auswusch. Es mußten also im Muskel durch die Tätigkeit gewisse „Ermüdungsstoffe“ entstanden und aufgehäuft sein, die auf die Muskelsubstanz selbst lähmend wirkten, nach deren Fortschaffung aber der Muskel seine Arbeitsfähigkeit wieder gewinnt. Das konnte RANKE durch folgenden Versuch tatsächlich bestätigen. Er machte ein wässeriges Extrakt aus Muskeln, die stark ermüdet waren, und spritzte dasselbe einem frischen Muskel durch die Blutgefäße ein. Die Folge davon war, daß dieser Muskel alsbald seine Leistungsfähigkeit verlor und sich ganz ähnlich wie ein ermüdeter Muskel verhielt. Es ist also durch diesen Versuch in der Tat bewiesen, daß Ermüdungssymptome durch das Anhäufen gewisser Stoffwechselprodukte im Muskel entstehen und durch das Ausspülen derselben wieder beseitigt werden können. In neuerer Zeit hat MOSSO[548] einen dem RANKEschen analogen Versuch am Hunde angestellt. Wenn er einem normalen Hunde Blut von einem anderen normalen Hunde einspritzte, blieb derselbe ebenfalls vollständig normal. Nahm er aber statt dessen zur Einspritzung Blut von einem ermüdeten Hunde, dessen Muskeln durch Tetanisieren mit dem elektrischen Strom auch nur zwei Minuten lang in heftige Kontraktion versetzt worden waren, so traten sofort charakteristische Ermüdungssymptome auf: die Atmung wurde beschleunigt bis zur Atemnot, und das Herz begann heftig zu schlagen. Die im Muskel erzeugten „Ermüdungsstoffe“ bleiben also nicht im Muskel, sondern werden vom Blut aufgenommen und gelangen so zu den Organen des ganzen Körpers, die sie allmählich vergiften und schließlich lähmen. Die Geschichte des Läufers von Marathon ist das klassische Beispiel für die daraus entstehende Folge von Vorgängen.
Ein weiteres wichtiges Moment für die Analyse der Veränderungen bei der Arbeitslähmung des Muskels ergibt sich aus den Bedingungen der „Erholung“. Wenn wir uns eine starke Muskelermüdung zugezogen haben, sei es lokal am Ergographen, sei es in größeren Muskelgruppen bei einer anstrengenden Bergbesteigung, so werden die ermüdeten Muskeln nach kürzerer oder längerer Zeit wieder von selbst ebenso leistungsfähig wie sie vorher waren. Es tritt eine vollkommene Erholung ein, ohne daß wir etwas dazu tun. Offenbar wird hier die Erholung besorgt durch den Blutstrom, der die Ermüdungsstoffe herausspült. Aber es ist noch eine andere Bedingung, die hier in Betracht kommt. Wie wir oben bereits sahen, vermag auch ein herausgeschnittener Muskel sich noch zu erholen, wenn auch nicht mehr so vollkommen wie im intakten Zusammenhange mit dem Körper bei ungestörter Blutzirkulation. Diese Tatsache war schon EDUARD WEBER[549] und VALENTIN[550] bekannt. Nun hat schon vor längerer Zeit HERMANN[551] und später wieder J. JOTEYKO[552] in RICHETs Laboratorium feststellen können, daß der ausgeschnittene und vollständig ermüdete Muskel sich nur erholt, wenn ihm Sauerstoff zur Verfügung steht, daß er dagegen unter Sauerstoffabschluß nach vollständiger Ermüdung seine Erregbarkeit nicht mehr wiedergewinnt. Der Sauerstoff ist also zur Wiederherstellung der Erregbarkeit des Muskels unbedingt erforderlich.
Ganz analog den Erfahrungen am Muskel sind die Ergebnisse des Studiums der Arbeitslähmung an den Ganglienzellen. Für die Untersuchung der Arbeitslähmung an diesen so sehr empfindlichen und so geschützt liegenden Zellen mußte erst eine Methodik ausgearbeitet werden, die es gestattete, einerseits diese Zellen in ihrem intakten Zusammenhang mit dem Körper in ihren Lebensäußerungen zu studieren und andererseits mit ihnen so zu experimentieren, daß sie unter ganz bestimmte Versuchsbedingungen gesetzt werden können. Das ist auf folgende Weise zu erreichen[553].