Drittes Kapitel. Von den elementaren Lebensäußerungen. (continued 3)
Reading edition
3. Der „zweite Hauptsatz.“
Zeigt uns so das Erhaltungsgesetz, daß alles Geschehen in der Welt vom energetischen Standpunkt aus als ein Umsatz von Energien betrachtet werden kann, so fragt es sich weiter, von welchen Bedingungen sind die Umwandlungen einer Energieform in die andere abhängig. Man könnte, wenn man eine lange Reihe von Vorgängen in der Natur als Energieumwandlungen erkannt hat, leicht auf die Vorstellung verfallen, daß jede Energieform sich ohne weiteres vollständig in jede beliebige andere umwandeln könne. Das ist aber keineswegs der Fall, sondern das Geschehen in der Welt, der Uebergang einer Energie in die andere ist sehr weitgehenden Beschränkungen unterworfen. Der Satz nun, der die allgemeinen Beschränkungen in dieser Hinsicht zum Ausdruck bringt, ist der sogenannte „zweite Hauptsatz“.
Das Fundament für den „zweiten Hauptsatz“ ist gelegt worden, ehe der erste Hauptsatz, d. h. das Erhaltungsgesetz entdeckt war, von dem jungen französischen Ingenieur SADI CARNOT im Jahre 1828. CARNOT, der sich mit Untersuchungen über die Frage beschäftigte, wie in der Dampfmaschine durch Wärme Arbeit erzeugt würde, formulierte zuerst die Tatsache, daß Wärme immer nur mechanische Arbeit leisten kann, wenn sie von einem Körper höherer auf einen Körper niedrigerer Temperatur übergeht. Die Erkenntnis dieser unscheinbaren Tatsache hat außerordentlich weittragende Konsequenzen nicht allein in theoretischer Beziehung, sondern vor allem auch für die praktische, sich daran anknüpfende Frage nach den Bedingungen für die Erzielung maximaler Arbeitsleistungen bei Maschinen der verschiedensten Art gehabt. Im obigen Falle von CARNOT ist also die Umwandlung von Wärme in mechanische Arbeit innerhalb eines geschlossenen Systems abhängig von der Temperaturdifferenz zwischen zwei verschiedenen Teilen des Systems. Ist die Temperatur in allen Teilen eines Systems gleich, so kann, mag das System noch soviel Wärme enthalten, keine mechanische Arbeit in ihm stattfinden. Die Temperatur ist der Intensitätsfaktor der Wärmeenergie. Alle Energieformen kann man definieren als das Produkt ihres „Intensitäts“- und „Kapazitäts“- (oder Extensitäts- oder materiellen) Faktors. So ist z. B. die elektrische Energie das Produkt aus der Spannung (Intensitätsfaktor) und der Elektrizitätsmenge (Kapazitätsfaktor), so ist die chemische Energie das Produkt aus der Affinität (Intensitätsfaktor) und der Stoffmenge (Kapazitätsfaktor), und so ist die Wärmeenergie das Produkt aus der Temperatur (Intensitätsfaktor) und der Entropie (Kapazitätsfaktor). Es hat sich nun gezeigt, daß das, was CARNOT für die Umsetzung von Wärme in Arbeit gefunden hatte, für alle energetischen Umsetzungen, d. h. für alle Naturvorgänge gilt. Energieumsetzungen in einem geschlossenen System können immer nur stattfinden, wenn zwischen den beteiligten Energien Intensitätsdifferenzen vorhanden sind. Das ist heute die allgemeinste Fassung des sogenannten „zweiten Hauptsatzes“.
Jeder Energieumsatz oder sagen wir einfach jeder Vorgang — denn jeder Vorgang ist ein Energieumsatz — besteht darin, daß die Energiedifferenz sich ausgleicht. Das kann schneller oder langsamer geschehen. Schließlich aber, wenn sich die Differenz ausgeglichen hat, ist ein Gleichgewichtszustand erreicht und das Geschehen ist zu Ende, das System befindet sich im Ruhezustande. Es kann jetzt erst wieder zu einer Leistung veranlaßt werden, wenn durch Energiezufuhr von außen das Gleichgewicht im System gestört wird. Dann findet wieder ein Energieumsatz statt, weil zwischen der Energie des Systems und der von außen einwirkenden Energie eine Intensitätsdifferenz besteht. Und wiederum dauert der Vorgang so lange an, bis sich die beiden aufeinander einwirkenden Energien gegenseitig von neuem ins Gleichgewicht gesetzt haben. In diesem Falle ist dann zwar innerhalb des Systems selbst eine Intensitätsdifferenz vorhanden, aber diese ist kompensiert durch die von außen einwirkende Energie. Es können also in einem System wohl Intensitätsdifferenzen bestehen, ohne daß ein Energieumsatz, ein Geschehen erfolgt, aber das ist nur der Fall, wenn die Differenz von außen her kompensiert ist. Ein Beispiel wird das anschaulicher machen. Eine unbelastete Hebelwage befindet sich im Energiegleichgewicht, d. h. in Ruhe. Belaste ich die eine Wageschale mit einem kleinen Gewicht, so störe ich das Gleichgewicht in der Wage und es tritt eine Bewegung ein solange bis ein neuer Gleichgewichtszustand erreicht ist. In diesem neuen Gleichgewichtszustande besteht zwar eine Intensitätsdifferenz der Energie zwischen den beiden Hälften der Wage an sich, aber diese ist kompensiert durch das von außen auf das System der Wage einwirkende Gewicht, und ebenso besteht zwischen dem Gewicht und der Luft eine Intensitätsdifferenz, denn das Gewicht würde, wenn es nicht durch die Wage gehalten würde, sich bewegen und zu Boden fallen. Schieben wir das Gewicht von der Wagschale herunter, so fällt es herab, bis auf dem Boden sich ein neuer Gleichgewichtszustand zwischen dem Gewicht und dem Gegendruck des Bodens hergestellt hat, und die Wage kehrt ebenfalls in ihre ursprüngliche Gleichgewichtslage zurück. Solche von außen kompensierte Intensitätsdifferenzen zwischen gleichen oder verschiedenen Energieformen finden wir nun auf Schritt und Tritt in der Welt. Bei allen möglichen Körpern, bei den verschiedenartigsten Systemen physikalischer und chemischer Natur können wir solche Energieintensitätssprünge, die von außen her kompensiert sind, beobachten. Sie sind nichts anderes als Systeme mit potentieller Energie.
Nach alledem können wir alle Dinge der Welt nach energetischen Gesichtspunkten in zwei Rubriken einordnen, in Vorgänge und Zustände. Vorgänge sind Energieumsetzungen, bedingt durch unkompensierte Intensitätsdifferenzen. Zustände sind Systeme von Energien, die sich im Gleichgewicht befinden.
4. Das Wärmemaß der Energie.
Um ein einheitliches Maß für die Messung irgendwelcher Energiemenge zu gewinnen, hat die Physik im Anschluß an Joules Untersuchungen über das Verhältnis von Wärme zu mechanischer Energie eine gewisse Wärmemenge als „Wärmeeinheit“ oder „Kalorie“ gewählt. Eine Kalorie ist diejenige Wärmemenge, welche notwendig ist, um ein Kilogramm Wasser von 0° auf 1° C zu erwärmen. Es ist indessen zweckmäßig, wenn man von Kalorien spricht, besonders hinzuzusetzen, ob es sich um solche „großen“ d. h. „Kilogrammkalorien“ handelt, oder um sogenannte „kleine“, d. h. „Grammkalorien“, die diejenige Wärmemenge repräsentieren, die nötig ist, um 1 Gramm Wasser von 0° auf 1° C zu erwärmen. Man wählte mit gutem Grunde die Wärme als diejenige Energieform, welche die Maßeinheit für alle anderen abgibt, denn die Wärme nimmt den anderen Energieformen gegenüber eine eigentümliche Stellung ein, insofern alle anderen Energieformen vollkommen in Wärme umgewandelt werden können, während es nicht gelingt, sämtliche Energieformen in jede beliebige andere Energieform vollkommen überzuführen. Die z. B. bei der Ueberführung von Wärme in mechanische Energie umwandelbare Energiemenge, die sogenannte „freie Energie“, ist immer nur ein Bruchteil der Gesamtenergie, und das gleiche gilt von der Ueberführung anderer Energieformen ineinander, wenn sie nicht in Wärme allein umgesetzt werden. Wenn wir daher irgendeine Menge einer beliebigen Energieform, etwa mechanischer oder chemischer Energie, zahlenmäßig ausdrücken wollen, so drücken wir sie im „Wärmemaß“ aus und geben die Anzahl der ihr äquivalenten Kalorien an. So entspricht z. B. eine Kilogrammkalorie in die Energieform mechanischer Arbeit umgerechnet einer Energiemenge, welche nötig ist, um ein Gewicht von 424 kg einen Meter hoch zu heben; man sagt: das „mechanische Aequivalent“ einer großen Kalorie ist 424 „Kilogrammmeter“, und umgekehrt: eine große Kalorie ist das „Wärmeäquivalent“ von 424 Kilogrammetern. Auf dieselbe Weise kann man auch alle übrigen Energieformen ihrer Menge nach in Wärmeäquivalenten ausdrücken. Die Kalorie ist die Maßeinheit für alle Energie.
A. Die Einfuhr von Energie in den Organismus.
Das Leben ist oft mit dem Feuer verglichen worden, eine Vorstellung, die schon in den ältesten mythologischen Naturauffassungen der Völker eine Rolle spielt und in der Philosophie des HERAKLIT bekanntlich zum ersten Male eine festere Form angenommen hat. Der Vergleich ist in vielen Punkten zutreffend. Wenn wir ihn weiter ausspinnen, dann ist unser Organismus die brennende Kohle, die sich fortwährend verzehrt, unser Atem das Verbrennungsgas, unsere Nahrung frisch aufgelegtes Brennmaterial, welches das alte immer wieder ersetzt. Wie der brennende Kohlenhaufen ein System vorstellt, in dem ein fortwährender Energieumsatz stattfindet dadurch, daß mit dem Brennmaterial potentielle Energie eingeführt und in die nach außen hin aktuellen Energieformen der Wärme, und bei geeigneter Verwendung, wie z. B. in der Dampfmaschine, der mechanischen Arbeit, umgesetzt wird, so ist auch der Organismus ein materielles System, in dem ein gleicher Energieumsatz fortdauernd stattfindet. Wie durch Aufschütten neuer Kohlen auf den Kohlenhaufen die Energie in potentieller Form zugeführt wird, so ist auch wenigstens im tierischen Organismus der weitaus größte Teil aller zugeführten Energie potentielle chemische Energie. Daher kommt es, daß die Einfuhr von Energie eine bedeutend weniger in die Augen fallende Lebensäußerung ist, als die in ausgiebigen Bewegungen und anderen augenfälligen Leistungen sich äußernde Produktion von aktueller Energie, die aus dem Umsatz der eingeführten potentiellen Energie hervorgeht.
1. Gesetz des Energieumsatzes bei chemischen Prozessen.
Da über den Energieumsatz bei chemischen Vorgängen vielfach etwas unklare Vorstellungen verbreitet sind, so wird es zweckmäßig sein, zunächst überhaupt erst einen Blick auf die allgemeinen Tatsachen des Energiewechsels bei chemischen Umsetzungen zu werfen.
Unter chemischer Energie verstehen wir die Arbeitsleistungen der Atome. Die chemische Energie besitzt in der chemischen Affinität ihren Intensitätsfaktor. Jedes Atom, wenn wir es uns einmal isoliert denken wollen, repräsentiert demnach ein kleines energetisches System, ein Energiemagazin. Die chemische Energie eines isoliert gedachten Atoms wäre potentiell, solange das Atom nicht Gelegenheit hätte, durch seine Affinität ein anderes Atom an sich zu binden. Sobald sich aber zwei Atome miteinander verbinden, geht ein der Stärke ihrer Affinität entsprechender Teil von potentieller Energie in aktuelle Energie über, die in Gestalt von Wärme, Licht, mechanischer Energie etc. frei wird. Da ferner die chemische Affinität eines Atoms zu verschiedenartigen anderen Atomen sehr verschieden groß ist, so wird um so mehr Energie frei werden, je stärker die Affinitäten sind, die gebunden werden. Eine chemische Verbindung muß also um so weniger frei verfügbare potentielle Energie enthalten, je stärker die Affinitäten sind, welche ihre Atome zusammengeführt haben. Umgekehrt: Sollen zwei miteinander verbundene Atome getrennt werden, so wird dazu eine gewisse Menge Energie gebraucht, und diese selbe Menge von aktueller Energie, welche jetzt verbraucht wird, um die Atome zu trennen, erscheint nach der Spaltung wieder in Form von potentieller chemischer Energie, meßbar durch die freigewordenen Affinitäten der Atome.
Ein Beispiel wird das Verhältnis noch anschaulicher machen. Haben wir über einer Quecksilberwanne einen starken Glaszylinder, der in einem kleinen vom Quecksilber freigelassenen Raume ein Gasgemisch aus zwei Dritteilen Wasserstoff und einem Dritteil Sauerstoff enthält, so haben wir ein Gemisch von Molekülen, deren Atome große Mengen potentieller Energie in Form von chemischen Affinitäten zueinander beherbergen. Stellen wir nun die Bedingungen her, daß sich die Sauerstoff- und Wasserstoffatome miteinander vereinigen können, so stürzen sie gierig aufeinander los, ziehen sich an und geben ihren gesamten Vorrat an potentieller Energie in Form von Wärme, Licht und mechanischer Energie nach außen ab. Es entsteht eine Flamme, der Zylinder wird stark erwärmt, und das Quecksilber wird mit Gewalt nach unten getrieben, steigt aber bald wieder höher und höher, denn der aus der Vereinigung von Wasserstoff- und Sauerstoffatomen entstehende Wasserdampf verdichtet sich mit zunehmender Abkühlung zu tropfbarem Wasser, das schließlich nur einen winzigen Raum im Zylinder einnimmt. So ist bei der Synthese des Wassers aus Wasserstoff und Sauerstoff die potentielle Energie der chemischen Affinitäten in aktuelle Energie umgesetzt und als Wärme, Licht etc. frei geworden. Das Wassermolekül hat also diese genau bestimmbare Energiemenge an die Umgebung verloren. Umgekehrt können wir die Atome des Wassers wieder voneinander trennen in Wasserstoff- und Sauerstoffatome, wenn wir dieselbe Energiemenge von außen her wieder zuführen. Am besten eignet sich dazu die Form der elektrischen Energie. Leiten wir einen elektrischen Strom durch das Wasser, so werden in demselben Maße, wie die elektrische Energie verschwindet, an den Polen der Drähte Wasserstoff- und Sauerstoffatome frei. Es wird also Energie verbraucht, um die Atome des Wassermoleküls voneinander zu spalten, aber diese Energie erscheint in den freiwerdenden Atomen als potentielle chemische Energie wieder, denn wenn wir den freiwerdenden Sauerstoff und Wasserstoff wieder zur Vereinigung bringen, dann gewinnen wir dadurch von neuem wieder aktuelle Energie usf.
Diese Betrachtung ist sehr wichtig, denn es ergibt sich daraus ein Satz von weittragender Bedeutung, der meist nicht klar genug formuliert wird, nämlich der Satz: Bei der Verbindung von Atomen wird aktuelle Energie frei, zur Trennung von Atomen dagegen wird aktuelle Energie verbraucht.
Dieser Satz, der eine notwendige Konsequenz aus dem Gesetz von der Erhaltung der Energie vorstellt, muß als Grundsatz für alle chemischen Umsetzungen betrachtet werden und bildet auch den Ausgangspunkt für das Verständnis aller Energieumsetzungen im lebendigen Organismus. Daß er in der Regel nicht mit genügender Klarheit hingestellt und angewendet worden ist, liegt vielleicht an der Tatsache, daß er in gewissen Fällen auf den ersten Blick scheinbar eine Ausnahme erleidet. Es ist zur Klarstellung dieser Verhältnisse nicht überflüssig, wenigstens kurz darauf einzugehen.
Wenn wir die Energie, die bei einem chemischen Prozeß umgesetzt wird, im Wärmemaß ausdrücken[206], so haben wir Prozesse, bei denen Wärme frei wird, und Prozesse, bei denen Wärme verbraucht wird. Nach der Ausdrucksweise der „Thermochemie“ bezeichnen wir die Produktion von Wärme bei einem chemischen Prozeß als „positive Wärmetönung“, den Verbrauch von Wärme dagegen als „negative Wärmetönung“. Nach unserer eben angestellten Betrachtung sollten wir also erwarten, daß alle synthetischen Prozesse, d. h. alle Prozesse, bei denen sich Körper miteinander verbinden, unter positiver Wärmetönung verlaufen, denn es werden ja bei jeder Synthese Atome verbunden, und bei Verbindung von Atomen wird Energie frei; umgekehrt wäre zu erwarten, daß alle Spaltungsprozesse, d. h. alle Prozesse, bei denen verbundene Atome getrennt werden, mit negativer Wärmetönung einhergehen. Das ist, wenn man die Begriffe Synthese und Spaltung in ihrer reinen Bedeutung anwendet, auch immer der Fall. Dennoch scheint es auf den ersten Blick gewisse Ausnahmen von dieser Regel zu geben. Es sind nämlich einerseits einige Synthesen in der Chemie bekannt, die wie z. B. die Synthese von Jodwasserstoff, mit Wärmeverbrauch verbunden sind, andererseits gibt es viele Spaltungen, namentlich komplizierterer Verbindungen, wie etwa des Nitroglyzerins oder anderer explosibler Stoffe, bei denen eine gewaltige Energieproduktion stattfindet. Das sind unbestreitbare Tatsachen. Allein, analysieren wir die Einzelheiten bei diesen Vorgängen etwas genauer, so klärt sich das scheinbare Paradoxon ohne weiteres auf und bestätigt vielmehr das Gesetz. Es liegt nämlich auf der Hand, daß, soweit nicht entweder freie Atome untereinander oder aber ganze Moleküle ohne Umlagerung ihrer Atome zu einer Verbindung zusammentreten oder aus einer Verbindung als präformierte Gruppen abgespalten werden, jeder Synthese eine Spaltung der aktiven Moleküle in ihre Atome vorhergehen und jeder Spaltung eine Synthese der freigewordenen Atome zu neuen Molekülen folgen muß. In diesen Fällen verläuft also keine Synthese ohne vorhergehende Spaltung, und keine Spaltung ohne nachfolgende Synthese. Hiernach leuchtet es ein, daß unter Umständen bei einer Synthese eine negative Wärmetönung bestehen kann, wenn nämlich, wie im Jodmolekül, die Jodatome oder im Wasserstoffmolekül die Wasserstoffatome zueinander größere Affinität haben als die Jodatome zu den Wasserstoffatomen. Dann wird mehr Energie verbraucht, um die Atome des Jodmoleküls und die Atome des Wasserstoffmoleküls voneinander zu spalten, als frei wird, wenn die Jod- und Wasserstoffatome sich zu einem Jodwasserstoffmolekül vereinigen, und da ja bei jedem kalorimetrischen Experiment nur der Enderfolg zur Beobachtung gelangt, nie die Zwischenprozesse, so erklärt es sich, weshalb am Ende der Reaktion sich ein Wärmeverbrauch, eine negative Wärmetönung herausstellen muß. Das Umgekehrte ist bei den Spaltungsvorgängen mit positiver Wärmetönung der Fall. Das Nitroglyzerin (Salpetersäure-Triglyzerid) explodiert bekanntlich bei Erschütterungen unter ungeheurer Energieentwicklung, indem es in Wasser, Kohlensäure, Sauerstoff und Stickstoff zerfällt. Diese Zerfallsprodukte sind aber strukturchemisch nicht im Nitroglyzerinmolekül präformiert, sondern gehen erst durch synthetische Umlagerung der Atome aus demselben hervor. Da die Atome des Wassers, der Kohlensäure, des Sauerstoffs und des Stickstoffs in dieser Anordnung aber viel größere Affinitäten zueinander haben als in der Lagerung, die sie im Nitroglyzerinmolekül hatten, so genügt eine kleine Energiemenge, um den Zerfall des Nitroglyzerinmoleküls herbeizuführen, während aus den Umlagerungssynthesen eine außerordentlich große Energiemenge frei wird. Daher erhalten wir als Endresultat eine positive Wärmetönung. Also ebensowenig, wie streng genommen bei der Jodwasserstoffsynthese der Wärmeverbrauch auf Rechnung der Synthese zu setzen ist, ebensowenig stammt in Wirklichkeit die Energieproduktion bei der Dynamitexplosion aus der Spaltung des Nitroglyzerinmoleküls. Es ist notwendig, daß man sich diese Tatsache einmal klar gemacht hat. Da aber nun allgemein, wenn von einer Synthese gesprochen wird, die vorhergehende Spaltung, und wenn von einer Spaltung gesprochen wird, die nachfolgende Synthese unberücksichtigt gelassen wird, so ist es genauer, das Grundgesetz des Energiewechsels bei chemischen Prozessen in folgender Form auszusprechen: Werden bei einem chemischen Prozeß stärkere Affinitäten gebunden als getrennt, so wird aktuelle Energie frei; werden dagegen stärkere Affinitäten getrennt als gebunden, so verläuft der Prozeß mit Energieverbrauch.
2. Die Zufuhr von chemischer Energie in den Organismus.
Nach den obigen Betrachtungen ist es klar, daß chemische Energie in den Organismus nur eingeführt werden kann, wenn die Nahrungsstoffe Affinitäten enthalten, die zu binden im Organismus Gelegenheit geboten wird. Es müssen also Stoffe in den Körper eingeführt werden, die chemische Umsetzungen mit positiver Wärmetönung erfahren. Das geschieht in der Tat auch auf die zweierlei Weise, die wir eben kennen lernten, nämlich einerseits, indem einfache Stoffe mit starken Affinitäten eingeführt werden, die sich leicht mit anderen Stoffen unter positiver Wärmetönung verbinden, und zweitens, indem zusammengesetzte Verbindungen aufgenommen werden, die leicht spaltbar sind und wie die explosiblen Körper unter Umlagerung der Atome in einfachere Verbindungen mit fester Bindung der Atome zerfallen.
Starke Affinitäten gelangen vor allem mit dem Sauerstoff in den Körper, und es ist ja allgemein bekannt, daß bei der Vereinigung des Sauerstoffs mit anderen Stoffen, d. h. bei der Oxydation oder Verbrennung eine große Menge von Energie frei wird. Die Oxydationsprozesse spielen aber im Leben fast aller Organismen eine überaus wichtige Rolle, und es ist also, wie wir schon sahen, der Vergleich des Lebens mit dem Feuer ein durchaus glücklicher gewesen.
Komplexe Verbindungen mit lockerer Bindung der Atome, die zur Umsetzung in einfachere Stoffe mit festen Atombindungen neigen, gelangen beim Tier mit der organischen Nahrung in großer Menge in den Organismus. Es sind dies Stoffe aus den Gruppen der Eiweißkörper, Fette und Kohlehydrate. Alle diese Stoffe unterliegen im Tierkörper umfangreichen Umformungen, aus denen zunächst einmal in der Assimilationsphase des Stoffwechsels die spezifischen komplexen Verbindungen der lebendigen Substanz aufgebaut werden, die zum Teil noch labiler sind als die eingeführten organischen Nahrungsstoffe an sich. Die Prozesse der Assimilationsphase des Stoffwechsels werden daher im ganzen mit Energieaufnahme und Energieaufspeicherung in potentieller Form verbunden sein. Beim Tier ist aber der Weg von den aufgenommenen Nahrungsstoffen bis zur Bildung der spezifischen Verbindungen, welche die lebendige Substanz aufbauen, verhältnismäßig kurz, da das Tier schon fertige organische Nahrung in den genannten Verbindungen aufnimmt. Bei der Pflanze dagegen ist der Weg viel länger. Da die Pflanze als Nahrung nur die einfachsten anorganischen Verbindungen benutzt, wie Kohlensäure, Wasser, Salpeter etc., die wenig oder gar keinen Energiegehalt haben und da andererseits die Aufbauprozesse der Assimilationsphase im ganzen mit einem Energieverbrauch verknüpft sind, so muß für die Pflanze eine andere Energiequelle zur Verfügung stehen, aus der erst durch Energieumsatz die chemische potentielle Energie gewonnen wird, die in den komplexen Verbindungen, welche die lebendige Substanz zusammensetzen, aufgespeichert ist. Wir werden gleich sehen, welche Energiequelle das ist.
In der Dissimilationsphase des Stoffwechsels zerfallen die komplexen Verbindungen der lebendigen Substanz schließlich, und zwar zum großen Teil durch oxydative Aufspaltung mit Hilfe des aufgenommenen Sauerstoffs, zum Teil auch durch enzymatische und andere Spaltungsvorgänge in einfache Verbindungen mit fester Bindung der Atome, wie Kohlensäure, Wasser und einfache stickstoffhaltige Stoffe, also in die gleichen Verbindungen, aus denen in der grünen Pflanze die komplexen Verbindungen der lebendigen Substanz aufgebaut worden sind. Wie der Aufbau von lebendiger Substanz aus diesen einfachen Stoffen mit Energieaufnahme, d. h. mit Energieaufspeicherung verbunden war, so ist der Zerfall von lebendiger Substanz in diese einfachen Verbindungen natürlich mit Energieproduktion, d. h. mit Energieabgabe verknüpft. Die Dissimilationsprozesse gehen also im ganzen mit Energieentfaltung nach außen einher. In ihnen liegt die Quelle für die mannigfaltigen Leistungen der lebendigen Substanz.
Wie beträchtlich aber die Energiemengen sind, die beim Tier mit der organischen Nahrung in Form von potentieller chemischer Energie aufgenommen werden, das geht aus den Wärmemengen hervor, die bei der Oxydation dieser Stoffe, sei es im Tierkörper, sei es im Kalorimeter frei werden. So beträgt z. B. die Verbrennungswärme für 1 g trocknen Eiweißes 4,998, also rund 5,000 Kilogrammkalorien, für 1 g Rohrzucker 3,348 Kilogrammkalorien und für 1 g Butterfett 7,264 Kilogrammkalorien. Danach gewinnt man einen Begriff davon, wie große Energiemengen z. B. beim Menschen täglich in den Körper eingeführt werden, wenn man etwa das von BUNGE angegebene Kostmaß zugrunde legt, das für einen mittelgroßen Arbeiter 118 g Eiweiß, 500 g Kohlehydrate und 56 g Fett beträgt.
3. Die Zufuhr von Licht.
Wenn wir sagen: Die Hauptmasse aller in den Organismus eingeführten Energie gelangt als chemische Energie in den Körper, so ist dieser Satz für die tierischen Organismen ohne Einschränkung gültig, für die pflanzlichen bedarf er indessen einer Korrektur. Zwar ist auch in der Pflanze die potentielle Energie, auf deren Kosten ihre Leistungen gehen, überwiegend chemische Energie, aber der größte Teil derselben wird nicht sogleich als frei verfügbare Energie, wie sie etwa der Sauerstoff besitzt, in den Körper eingeführt, sondern es ist erst die Zufuhr einer anderen Energieform notwendig, um verfügbare chemische Energie zu schaffen. Wir wissen, daß zur Synthese des ersten Assimilationsprodukts Kohlensäure und Wasser erforderlich sind[207]. Kohlensäure und Wasser sind aber Moleküle, die als solche gar keinen chemischen Energiewert besitzen, weil ihre Atome in dieser Verbindung durch sehr starke Affinitäten aneinander gekoppelt sind. Um sie daher frei und für neue Leistungen verfügbar zu machen, müssen diese Moleküle erst gespalten werden, und dazu ist Energiezufuhr nötig. Die Energie, welche diese Spaltung vollzieht, ist im Verein mit der chemischen Energie der lebendigen Pflanzensubstanz selbst das Licht. Ohne Licht ist daher kein Leben der Pflanze möglich, und da ohne Pflanzenleben kein Tierleben existieren kann, so kann man sagen, daß ohne Licht überhaupt kein Leben bestehen würde. Wenn also auch das Licht direkt nur in der Pflanze als Energiequelle eine wesentliche Rolle spielt, so ist es doch eine Energieform, die für die Erhaltung des Lebens auf der Erdoberfläche ebenso unentbehrlich ist wie die chemische Energie der Nahrung.
Der Ort, wo in der Pflanze das Licht die Spaltung der Kohlensäure bewirkt, liegt in den grünen Teilen des Pflanzenkörpers, also vor allem in den Blättern. Man überzeugt sich davon am besten durch den auf p. 190 beschriebenen Assimilationsversuch. Dabei zeigt sich, daß für die Beteiligung der Lichtstrahlen an der Kohlensäurespaltung in den grünen Pflanzenzellen zwei Momente ausschlaggebend sind, einerseits die Intensität und andererseits die Wellenlänge der Strahlen. Die Wirksamkeit des Lichtes nimmt mit der Intensität desselben zu, so daß in hellerem Licht mehr Kohlensäure gespalten wird als in weniger hellem. Ferner sind bei gleicher Intensität die Strahlen des roten Lichtes (nicht wie die Botaniker früher annahmen, die des gelben) am wirksamsten. ENGELMANN[208] hat durch eine mikroskopische Methode, die auf der Wirkung des bei der Kohlensäurespaltung frei werdenden Sauerstoffs auf Bakterien beruht, in einer ganzen Reihe von Arbeiten diese Tatsache über allen Zweifel erhoben. Bei den Untersuchungen ENGELMANNs hat sich gleichzeitig die Ansicht bestätigt, daß die Kohlensäurespaltung in der grünen Pflanzenzelle nur in den Chlorophyllkörpern derselben stattfindet, und schließlich hat sich herausgestellt, daß die Kohlensäurespaltung sofort mit Einwirkung des Lichts beginnt, um bei Verdunklung auch augenblicklich wieder aufzuhören. Die Abhängigkeit der kohlensäurespaltenden Tätigkeit der Chlorophyllkörper vom Licht ist also eine außerordentlich enge.
4. Die Zufuhr von Wärme.
Die Wärme endlich, die teils als strahlende, teils als zugeleitete Wärme von außen her in den lebendigen Organismus hineingelangt, spielt ähnlich wie das Licht eine Rolle bei den chemischen Umsetzungen in der lebendigen Substanz, und da wir wissen, daß mit zunehmender Temperatur die Zersetzbarkeit aller chemischen Verbindungen zunimmt, so können wir sagen, daß auch die zugeführte Wärme vor allem bei Spaltungsprozessen in der lebendigen Substanz beteiligt ist. Die Rolle der Wärme als Energiequelle ist besonders deutlich zu erkennen bei den sogenannten Kaltblütern, die man richtiger als „wechselwarme (poikilotherme) Tiere“ bezeichnet hat, da sie im Gegensatz zu den sogenannten Warmblütern oder „gleichwarmen (homoiothermen) Tieren“, die eine stets konstante Körpertemperatur haben, ihre Körpertemperatur mit der Temperatur der Umgebung fortwährend wechseln, so daß sie bei hoher Außentemperatur mitunter eine Körpertemperatur haben können, die der Temperatur der gleichwarmen Tiere gleichkommt. Diese wechselwarmen oder poikilothermen Tiere, wie z. B. die Insekten, Reptilien etc., sind bei hoher Temperatur des Mediums, in dem sie leben, äußerst lebhaft, bewegen sich viel und zeigen überhaupt eine intensive Tätigkeit. Mit abnehmender Temperatur nimmt dagegen auch die Lebhaftigkeit ihrer Bewegungen ab, und bei 0° bemerkt man in vielen Fällen kaum noch eine Lebenstätigkeit in ihnen: der Energieumsatz ist fast sistiert. „Wohin man blickt in das Reich der lebendigen Organismen“, sagt PFLÜGER[209], „sieht man, wie die Intensität der Lebensvorgänge, also die Zersetzung, der Temperatur proportional wächst. Betrachte ich die lebhafte, bewegliche, flinke Eidechse im Sommer, und wie sie, wenn man sie einer Temperatur unter 0° aussetzt, allmählich ruhig wird und in Torpor versunken einem Scheintoten gleicht, und frage ich mich, was die Ursache sei, daß das Tier in der Wärme wieder so aktiv wird, so sagt mir der Augenschein: weil ihren Organen Wärme zugeführt worden ist, die die Atome der Molekeln in Schwingungen versetzt und ihre Dissoziation erzeugt.“ Die zugeführte Wärme dient also auf diese Weise direkt als eine Energiequelle für die Leistungen des Kaltblüterorganismus. Für den Warmblüterkörper kommt die Wärme als Energiequelle kaum in Betracht. Dagegen spielt sie für den Pflanzenkörper wieder eine ebenso große Rolle wie für den Kaltblüter, denn Pflanzen keimen und wachsen nur, wenn ihnen von außen eine gewisse Menge Wärme zugeführt wird. Unterhalb einer gewissen Temperatur sinkt das Energiegetriebe im Pflanzenkörper auf Null.
Damit sind aber die Energiequellen des Organismus erschöpft. Die anderen Energieformen haben als Energiequellen für die Leistungen des lebendigen Organismus kaum eine Bedeutung.
C. Die Energieproduktion des Organismus.
Die vielverschlungenen Wege zu übersehen, welche die eingeführte Energie bei ihren mannigfaltigen Umformungen im lebendigen Körper einschlägt, ist zurzeit noch vollständig unmöglich. Es ist noch kaum der Anfang gemacht worden, die Umsetzungen zu erforschen, welche die eingeführte Energie unter den verschiedenen Bedingungen erfährt, die sie in der lebendigen Substanz findet. Hier bedarf es erst einer langen Reihe eingehender Spezialuntersuchungen, vor allem einer tiefergehenden Erkenntnis der Stoffwechselvorgänge, ehe wir uns ein übersichtliches Bild von dem Getriebe des Energieumsatzes im Organismus machen können. Gerade das Gebiet der physiologischen Energetik bietet noch reichliche und äußerst lohnende Probleme für die Zukunft, die bisher kaum beachtet worden sind. Was wir erst wieder mit Sicherheit kennen, das sind die Endglieder der Reihe von Umwandlungen, welche die eingeführte Energie auf ihrem Wege durch den Körper erfahren hat, das sind die äußeren Leistungen des lebendigen Organismus.
Die nach außenhin gehende Energieentwicklung, vor allem die Entwicklung mechanischer Energie, wie sie sich in den Bewegungen des lebendigen Körpers äußert, ist von allen Lebensäußerungen unzweifelhaft die augenfälligste, sie ist geradezu für den unbefangenen Beobachter mehr oder weniger das erste Kriterium des Lebens, und es mag damit zusammenhängen, daß die Physiologie von jeher mit Vorliebe die Bewegungsvorgänge zum Objekt ihrer Forschungen gemacht hat. Weniger in die Augen fallend, weil entweder nur wenig verbreitet oder schwer zu beobachten, ist die Produktion anderer Energieformen von seiten der lebendigen Substanz, wie des Lichtes, der Wärme und der Elektrizität.
1. Die Produktion mechanischer Energie.
Alle lebendige Substanz bewegt sich, d. h. die einzelnen Punkte ihres materiellen Systems verändern ihre Lage im Raum. Daraus resultiert je nach den speziellen Bedingungen entweder eine Verschiebung der einzelnen Teilchen bei gleichbleibender äußerer Form oder eine Veränderung der äußeren Form oder eine Ortsveränderung des Ganzen (Lokomotion) oder schließlich mehreres gleichzeitig. Wenn aber zwar die Bewegung an sich eine allgemeine Lebensäußerung ist, so zeigt doch nicht jede Form der lebendigen Substanz die gleiche Art der Bewegung. Die Mannigfaltigkeit der Bewegungsmodi, die sich an den verschiedenen Organismen beobachten lassen, ist sehr groß. Dennoch lassen sich alle Bewegungsmodi nach der Art ihres Zustandekommens in einige wenige große Gruppen einreihen, von denen wieder nur einzelne durch ihre weite Verbreitung eine hervorragende Bedeutung besitzen. Da die Bewegung der lebendigen Substanz ihre augenfälligste Lebensäußerung ist und das Interesse daher am meisten auf sich lenkt, wird es gerechtfertigt sein, wenn wir uns mit den einzelnen Formen der Bewegung etwas eingehender beschäftigen.
Es ist zunächst zweckmäßig, die verschiedenen Bewegungsmodi übersichtlich zu unterscheiden:
Passive Bewegungen,
Bewegungen durch Quellung der Zellwände,
Bewegungen durch Veränderung des Zellturgors,
Bewegungen durch Veränderung des spezifischen Gewichts der Zelle,
Bewegungen durch Sekretion von seiten der Zelle,
Bewegungen durch Wachstum,
Bewegungen durch Kontraktion und Expansion des Zellkörpers: Amöboide Bewegung, Muskelbewegung, Flimmerbewegung.
a) Passive Bewegungen.
Bei den passiven Bewegungen liegt die Energiequelle der Bewegung außerhalb des bewegten Systems. Die passiven Bewegungen in der lebendigen Substanz sind also nicht Lebensäußerungen der bewegten Teile selbst, sondern Ausdruck von Lebensäußerungen in ihrer Umgebung. Die Bewegung der roten Blutkörperchen, die Strömung der Blutflüssigkeit in den Blutgefäßen des menschlichen Körpers ist eine passive, denn die Blutkörperchen und die Blutflüssigkeit besitzen keine Eigenbewegung, sondern werden lediglich passiv durch die Tätigkeit des Herzens, das wie eine Saug- und Druckpumpe in dem mit Blut gefüllten Röhrensystem des Gefäßbaumes wirkt, getrieben. Man kann diese Strömung des Blutes in den feinen Kapillargefäßen unter dem Mikroskop sehr schön beobachten, wenn man einen durch das indianische Pfeilgift „Curare“ gelähmten Frosch auf eine Korkplatte bringt und über einer Oeffnung in derselben mit Nadeln die Schwimmhaut zwischen den Zehen der hinteren Extremität ausspannt. Dann gewinnt man unter dem Mikroskop ein Bild, das jeden Beschauer mit Interesse erfüllt. Man sieht das weitverzweigte Netz des Kapillargefäßsystems, in dem das Blut mit seinen gelb erscheinenden Blutkörperchen so langsam fließt, daß man jedes einzelne Blutkörperchen bequem verfolgen kann, wie es sich in der klaren Blutflüssigkeit durch die feinen Kanäle und Umbiegungsstellen hindurchwindet (Fig. 99). Noch günstigere Objekte sind die Gefäße der gefüllten Harnblase des Frosches[210].
Schon in der einzelnen Zelle finden wir solche passiven Bewegungen. Die feinen Körnchen, die im Protoplasma der nackten Rhizopodenzellen eingebettet liegen, zeigen besonders auf den langen, fadenförmigen Pseudopodien der Meeresrhizopoden eine strömende Bewegung, die sogenannte „Körnchenströmung“, die einen ähnlich fesselnden Anblick gewährt wie die Strömung des Blutes in den Kapillargefäßen, und nur viel langsamer erfolgt. Wie die Spaziergänger auf einer Straße oder wie die Ameisen auf ihren langen, selbstangelegten Wegen ziehen die Körnchen dahin, bald in zentrifugaler, bald in zentripetaler Richtung, bald stillstehend, bald umkehrend, bald weiter fortschreitend. Diese Körnchenströmung kommt nicht zustande durch aktives Vorwärtsrücken der Körnchen selbst, sondern durch passives Mitgeschlepptwerden von seiten der flüssigen protoplasmatischen Grundsubstanz, in der sie eingebettet liegen, und die selbst stets in aktiv fließender Bewegung begriffen ist.
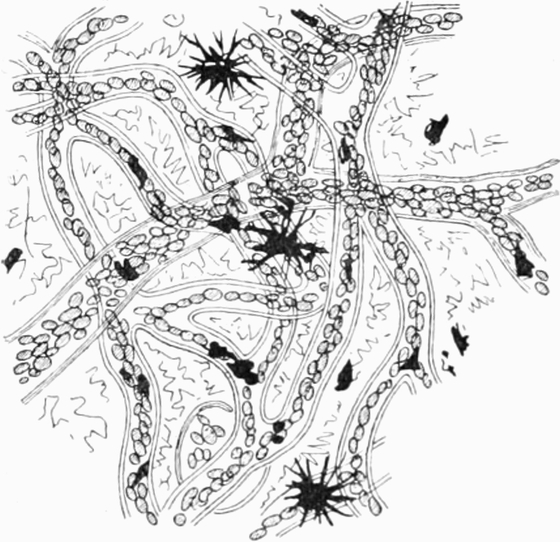
Fig. 99.
Kapillarkreislauf in der Schwimmhaut des Frosches
. Aus R
ANKE
.
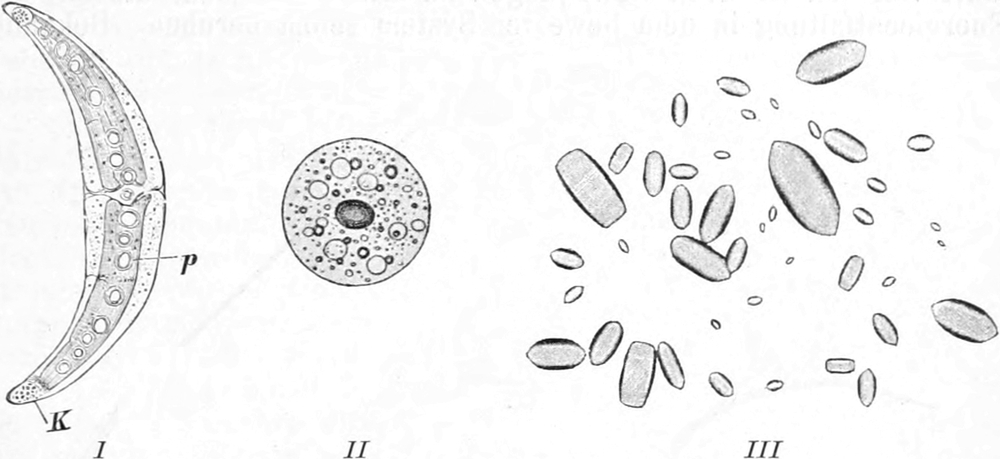
Fig. 100.
B
ROWN
sche Molekularbewegung
.
I
Closterium
, nach S
TRASBURGER
. In den an beiden Enden befindlichen Vakuolen
K
des sichelförmigen Zellkörpers sind zahlreiche Körnchen in lebhafter Molekularbewegung.
II
Sogenanntes Speichelkörperchen
, ein abgestorbener und kugelig zusammengezogener Leukocyt aus dem Speichel des Menschen, in dessen gequollenem Inhalt die Körnchen in tanzender Bewegung begriffen sind.
III
Kriställchen
aus den Kalksäcken des Frosches.
Eine ebenfalls sehr interessante Form der passiven Bewegungen, die in der lebendigen Zelle vorkommen, ist die sogenannte BROWNsche Molekularbewegung. Im Süßwasser lebt eine kleine, einzellige grüne Alge von zierlicher Mondsichelform, das Closterium (Fig. 100 I). Diese Alge hat in ihrem Protoplasma an beiden Enden des sichelförmigen Körpers je eine Flüssigkeitsvakuole, in welcher in der Regel einzelne feine Körnchen liegen, die BROWNsche Bewegung zeigen. Die Körnchen sind nämlich, wie man bei stärkerer Vergrößerung sieht, in einem fortwährenden feinen Zittertanz begriffen, aber ohne große Ortsbewegungen auszuführen. Der Tanz geht unermüdlich fort und findet nie ein Ende. Das ist ein lebendiges Objekt, an dem diese eigentümliche Bewegung zu sehen ist. Viel öfter beobachtet man sie aber in abgestorbenen Zellen, und lange bekannt ist sie in den sogenannten Speichelkörperchen des Mundspeichels, die weiter nichts sind als abgestorbene Leukocyten (weiße Blutkörperchen). Diese toten Leukocyten sind durch Wasseraufnahme zur Kugelform aufgequollen und besitzen einen Zellkern, den ein körniges Protoplasma umgibt (Fig. 100 II). Die Körnchen dieses aufgequollenen Protoplasmas zeigen bei starker Vergrößerung deutlich Molekularbewegung. Daß die BROWNsche Molekularbewegung keine ausschließlich im lebendigen Organismus vorkommende Bewegungsform ist, geht übrigens aus der Tatsache hervor, daß alle leichten mikroskopischen Körnchen irgendwelcher Art, wenn sie in Wasser oder einer anderen leicht beweglichen Flüssigkeit suspendiert sind, diese seltsame Bewegung zeigen. Eines der schönsten leblosen Objekte, die im Organismus vorkommen, sind in dieser Hinsicht die feinen Kriställchen (Fig. 100 III) aus den Kalksäckchen, welche in der Leibeshöhle der Frösche zu beiden Seiten der Wirbelsäule zwischen je zwei Wirbelfortsätzen liegen. Bringt man etwas von ihrer weißen Substanz in einen Tropfen Wasser und betrachtet man diesen unter einem Deckglas mit dem Mikroskop bei starker Vergrößerung, so hat man, besonders an den kleineren Kriställchen, den wunderbaren Anblick des rastlosen Zittertanzes lebloser Kristalle in anmutigster Form[211]. Als der englische Botaniker BROWN im Jahre 1827 solche eigentümliche Bewegungen in Pflanzenzellen entdeckt hatte, glaubte man, darin eine aktive Bewegung der feinen Körnchen selbst erblicken zu müssen, die aus den Schwingungen ihrer Moleküle resultierte, und nannte sie deshalb „Molekularbewegung“. Allein nach unseren heutigen Anschauungen ist diese Auffassung als unhaltbar fallen gelassen worden, und man war lange Zeit im unklaren über die Deutung dieser rätselhaften Bewegung, bis 1863 WIENER[212] und bald darauf EXNER ihre physikalischen Bedingungen sehr sorgfältig studierten und eine Erklärung dafür fanden, die mit unseren jetzigen Auffassungen von dem molekularen Zustande der Flüssigkeiten im besten Einklang steht. Ja, das Verhalten der Moleküle einer Flüssigkeit fordert sogar geradezu derartige Bewegungsvorgänge von kleinen leichten Partikelchen, die in ihr suspendiert sind. Bekanntlich stellen wir uns vor, daß die Moleküle in einer Flüssigkeit in fortwährender Bewegung sind und durcheinanderwimmeln, indem sie aneinanderprallen, sich abstoßen, nach anderer Richtung sich bewegen, wieder anstoßen etc. Diese Bewegung der Moleküle können wir selbst mit den stärksten Vergrößerungen nicht sehen, denn die Flüssigkeiten erscheinen uns homogen, weil ihre Moleküle zu klein sind, um selbst mikroskopisch wahrgenommen werden zu können. Dagegen können wir den Erfolg ihrer Bewegungen an kleinen, leichten Körnchen erkennen, die in der Flüssigkeit schweben, und die, wenn die Moleküle die angegebene Bewegungsart besitzen, von ihnen fortwährend gestoßen werden müssen, so daß sie bei ihrer leichten Beweglichkeit in ein zitterndes Tanzen geraten. Die sogenannte BROWNsche Molekularbewegung kleiner Körnchen ist also eine rein passive Bewegung, die hervorgebracht wird durch die fortwährenden kleinen Stöße, welche die anprallenden Flüssigkeitsmoleküle auf sie ausüben. Einen treffenden Beweis für die Richtigkeit dieser Auffassung liefert die Tatsache, daß die BROWNsche Bewegung mit zunehmender Temperatur der Flüssigkeit an Intensität gewinnt. Das war vorauszusagen, da wir wissen, daß die Bewegung der Moleküle einer Flüssigkeit um so intensiver wird, je mehr die Temperatur steigt, bis sie schließlich so mächtig wird, daß die einzelnen Moleküle heftig auseinanderstieben, d. h. bis die Flüssigkeit verdampft.
b) Bewegungen durch Quellung der Zellwände.
In den Bewegungen, welche durch Quellung der Zellwände zustande kommen, haben wir eine Bewegungsform, welche uns hinüberführt von den passiven Bewegungen zu allen folgenden, die nur auf Energieentfaltung in dem bewegten System selbst beruhen. Bekanntlich kommt eine Quellung dadurch zustande, daß sich zwischen die Moleküle eines trockenen, quellbaren Körpers, der in eine feuchte Umgebung gebracht wird, Wassermoleküle lagern, die durch Molekularattraktion von den Molekülen des Körpers so stark angezogen werden, daß sie seine Moleküle selbst mit großer Kraft auseinanderdrängen, wodurch das Volumen des Körpers bedeutend vergrößert wird. Kommt der gequollene Körper wieder in wasserfreie Umgebung, etwa in trockene warme Luft, so gibt er allmählich wieder sein Quellungswasser ab, vermindert im selben Maße sein Volumen und schrumpft ein, um bei neuer Anfeuchtung von neuem zu quellen. Die Quellbarkeit ist besonders bei organischen Produkten des Stoffwechsels der Pflanzen verbreitet, vor allem bei den Zellulosewänden der Pflanzenzellen. Sie ist durchaus nicht an das Leben der Pflanzenzelle gebunden, sondern besteht an den Zellulosegebilden der toten Zellen unbegrenzt lange fort in derselben Weise wie an den Zellulosewänden der lebendigen Zellen. Damit eine einseitig gerichtete Bewegung durch die Volumenzunahme bei der Quellung oder durch die Volumenabnahme beim Austrocknen an irgendeinem quellbaren Objekt, etwa einem Blattstiel oder einer Membran, zustande kommen kann, müssen die einzelnen Seiten derselben verschieden quellbar sein, es muß die eine Seite stark quellen, während die andere nur schwach quillt oder gar nicht. Wären alle Teile gleich stark quellbar, dann würde nur eine gleichmäßige Vergrößerung nach allen Seiten eintreten. Quillt dagegen bei einem langgestreckten Gebilde eine Seite stärker als die ihr gegenüberliegende, so dehnt sich die erstere aus, während die letztere kürzer bleibt, und die Folge ist eine Biegung des ganzen Gebildes, die, je nachdem die Quellung schnell oder langsam eintritt, plötzlich oder allmählich erfolgt.
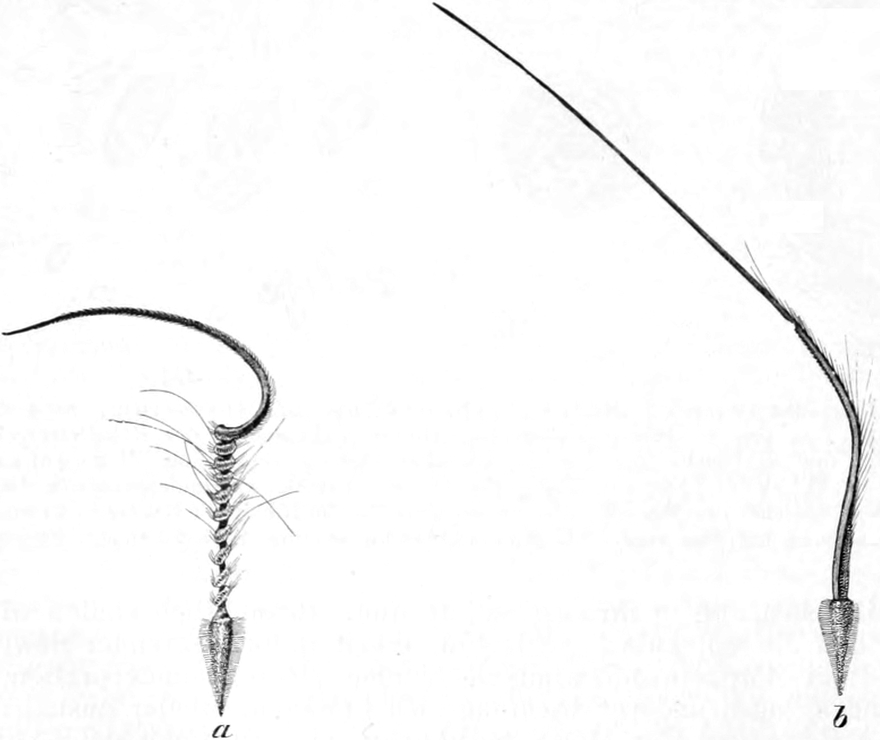
Fig. 101.
Storchschnabelsamen
(
Erodium cicutarium
),
a
in getrocknetem,
b
in gequollenem Zustande.
Charakteristische Objekte für die Beobachtung der Quellungsbewegungen sind die bekannten, neuerdings häufig aus den amerikanischen Wüsten nach Europa kommenden „Auferstehungspflanzen“ (Selaginella lepidophylla), die in der Trockenheit ihre Blattstiele faustartig zusammenlegen, angefeuchtet sie wieder handtellerartig nach außen biegen, indem die Blattstiele auf ihrer Innenseite stark quellen. Ganz ebenso verhalten sich die allbekannten „Rosen von Jericho“, die nichts anderes sind als die toten, ausgetrockneten Zweige einer in den arabischen Wüsten wachsenden Crucifere (Anastatica). Das Ausbreiten der getrockneten Zweige, wenn man sie in Wasser steckt, hat beim Volke den Glauben hervorgerufen, daß die „Rose von Jericho“ zu neuem Leben wieder aufersteht, während es sich in Wirklichkeit nur um Quellungsbewegungen der toten Zweige handelt. Die Selaginella dagegen ist eine wirkliche „Auferstehungspflanze“, insofern sie, völlig eingetrocknet, jahrelang liegen kann, ohne ihre Lebensfähigkeit einzubüßen. Sehr anschaulich zeigen auch die Samen mancher Storchschnabelarten die Tatsachen der Quellungsbewegungen. Erodium cicutarium hat Samen, die mit einem langen, von Härchen besetzten Stiel versehen sind, der in der Trockenheit korkzieherförmig zu einer schönen Spirale aufgerollt ist (Fig. 101 a), angefeuchtet sich aber gerade streckt, indem sich eine Windung nach der anderen durch Quellung und Streckung der Innenseite auseinanderrollt (Fig. 101 b).
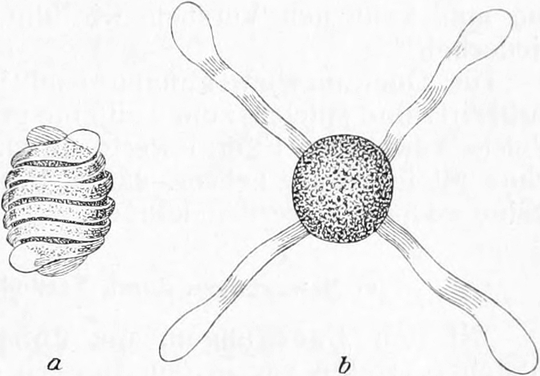
Fig. 102.
Spore eines Schachtelhalms
.
a
Die Elaterenbänder sind in feuchtem Zustande um die Sporenzelle herumgelegt;
b
die Elaterenbänder sind in trockenem Zustande auseinandergeschnellt.
Sehr interessant und durch die Schnelligkeit ihres Verlaufs geradezu frappierend sind die Quellungsbewegungen der sogenannten „Elateren“ an den Sporen der Schachtelhalme. Die reifen Sporen der Schachtelhalme sind runde Zellen, die von einer Zellulosemembran umgeben sind. Diese Zellulosemembran ist durch zwei Risse, die in einer Spirale von oben nach unten um die ganze Kugel herum verlaufen, in zwei Zellulosebänder, die „Elateren“, gespalten (Fig. 102), die an einer Stelle im Aequator der Kugel untereinander und an der Spore selbst befestigt sind. Bringt man die Sporen etwas angefeuchtet unter das Mikroskop, so sind die beiden Elaterenbänder zu zwei parallelen Spiralen zusammengelegt und bilden eine geschlossene Kapsel um die Spore (Fig. 102 a). Läßt man sie aber eintrocknen, so strecken sich die beiden Spiralen zu geraden Bändern aus (Fig. 102 b), indem die äußere Seite der Bänder durch Wasserabgabe eintrocknet und sich verkürzt. Haucht man sie in diesem ausgetrockneten Zustande an, während man gleichzeitig durch das Mikroskop sieht, so beobachtet man, daß sie fast blitzschnell sich wieder zu Spiralen um die Spore zusammenlegen, indem sich die äußere Fläche durch Quellung ausdehnt. Im Moment, wo die Feuchtigkeit des Hauches verfliegt, breiten sich dann ebenso schnell die Bänder wieder aus und man kann den Versuch, wie alle Quellungsversuche, beliebig oft wiederholen.
Die Quellungsbewegungen sind im Pflanzenreich ungemein weit verbreitet und spielen zum Teil eine große Rolle im Leben der Pflanze. Welche gewaltigen Energiewerte durch Quellung erzeugt werden, geht schon allein daraus hervor, daß z. B. mit quellenden Holzkeilen große Steine gespalten werden können.
c) Bewegungen durch Veränderung des Zellturgors.
Mit den Bewegungen, die durch Veränderung des Zellturgors entstehen, treten wir in den Bereich derjenigen Bewegungsarten ein, die unbedingt das intakte Leben des Objekts voraussetzen, an dem sie auftreten. Mit dem Tode ihres Substrats erlöschen diese Bewegungsformen. Auch die Turgeszenzbewegungen sind hauptsächlich im Pflanzenreich verbreitet. Erinnern wir uns daher zunächst, daß die Pflanzenzelle eine Zellulosekapsel vorstellt, die innen mit einer kontinuierlichen Protoplasmaschicht, dem Primordialschlauch, überzogen ist, und ferner, daß der Primordialschlauch die Eigenschaften einer semipermeablen Membran besitzt und eine Flüssigkeit einschließt, die osmotisch wirksame Stoffe enthält, für die der Primordialschlauch unter gewöhnlichen Verhältnissen nicht durchgängig ist. Infolge dieser Eigenschaften ist, wie wir sahen (vergl. p. 138), der Primordialschlauch durch Wasseraufnahme der Zelle von außen in den Zellsaft hinein gedehnt und mit ihm gleichzeitig die umgebende elastische Zellulosekapsel. Diese pralle Füllung der Zelle und Spannung der Zellwand, die durch die osmotischen Eigenschaften des Zellsaftes bedingt ist, repräsentiert bekanntlich den „Turgor“ der Zelle.
Der Turgor der Zelle kann nun auf verschiedene Weisen verändert werden. Erstens nämlich kann, wie wir schon früher gesehen haben, das Mengenverhältnis der osmotisch wirksamen Stoffe innerhalb und außerhalb der Zelle sich ändern, indem die Konzentration außen oder innen gesteigert oder herabgesetzt wird. Die Folge muß nach unseren früheren Betrachtungen ein Steigen oder Sinken des Turgors der Zelle sein. Ferner aber kann der Turgor auch sich ändern, indem die Wand des Primordialschlauchs aus irgendeinem Grunde durchlässig wird für die gelösten Stoffe des Zellsafts. Dann muß ein Ausgleich der osmotischen Druckdifferenzen durch Diffusion der osmotisch wirksamen Stoffe eintreten, und die Spannung, unter der die Zellwand stand, fällt weg. Schließlich aber wird auch eine Turgorveränderung eintreten, wenn die Spannung des Primordialschlauchs durch aktive Veränderungen seines Protoplasmas sinkt oder steigt. Kontrahiert sich z. B. das Protoplasma des Primordialschlauchs, so wird seine Kontraktion den ihr bisher entgegenwirkenden osmotischen Druck zum Teil oder ganz überwinden, und die Folge wird sein, daß entsprechend viel Wasser aus dem Zellsaft durch den Primordialschlauch nach außen hindurchgepreßt wird, ohne daß indessen die osmotisch wirksamen Stoffe mit hindurchtreten können. Läßt die Kontraktion des Primordialschlauchs wieder nach, so werden wieder mehr Wassermoleküle von außen nach innen hineintreten, und der Turgor wird wieder größer werden.
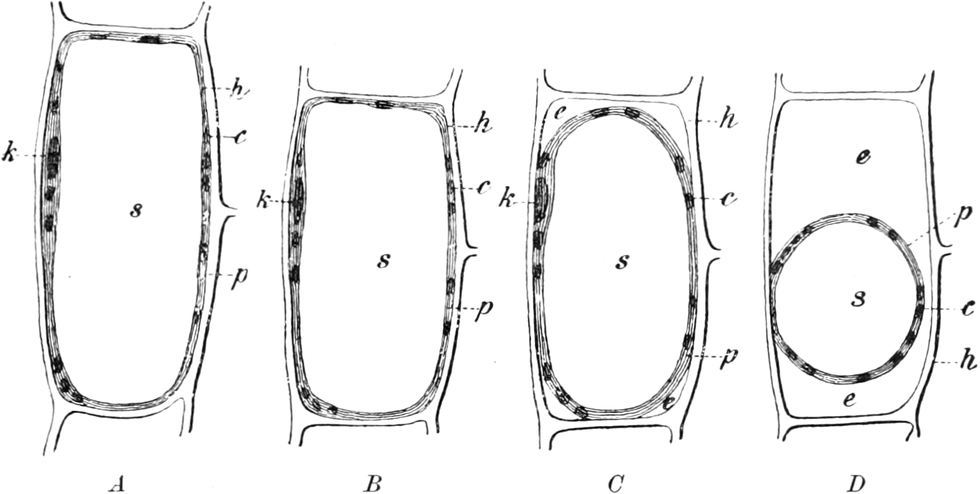
Fig. 103.
Schema des Zellturgors einer Pflanzenzelle
.
h
Zellmembran,
p
Primordialschlauch,
k
Zellkern,
c
Chlorophyllkörper,
s
Zellsaft,
e
eindringende Salzlösung. Bei
A
Zelle in voller Turgeszenz, der Primordialschlauch liegt der Zellmembran fest an. Bei
B
hat der Turgor infolge einwirkender Salzlösung abgenommen, die Zelle ist kleiner geworden, aber der Primordialschlauch liegt der Zellmembran noch an. Bei
C
ist der Turgor noch geringer geworden, der Primordialschlauch beginnt sich von der Zellhaut, die ihre geringste Größe erreicht hat, abzuheben. Bei
D
hat der Primordialschlauch sich vollständig zusammengezogen, weil die osmotische Wirkung der von außen her einwirkenden Salzlösung
e
sehr hohe Werte erreicht hat. Nach
DE
V
RIES
.
Gehen wir auf die Folge der Herabsetzung des Turgors ein, so muß diese in allen Fällen die gleiche sein: der Primordialschlauch, der vorher durch die Spannung von innen her stark ausgedehnt war, wird zusammensinken, und sein Umfang wird immer kleiner werden (Fig. 103). Was hier aber noch wichtiger ist, das ist das Kleinerwerden der ganzen Zelle bei Abnahme des Turgors, denn in demselben Maße wie die Spannung des Primordialschlauchs nachläßt, entspannt sich auch die elastische Zellulosehülle und nimmt infolge ihrer Elastizität schließlich einen Umfang an, wie er ihrem vollkommenen Entspannungszustande entspricht (Fig. 103 B, C, D).
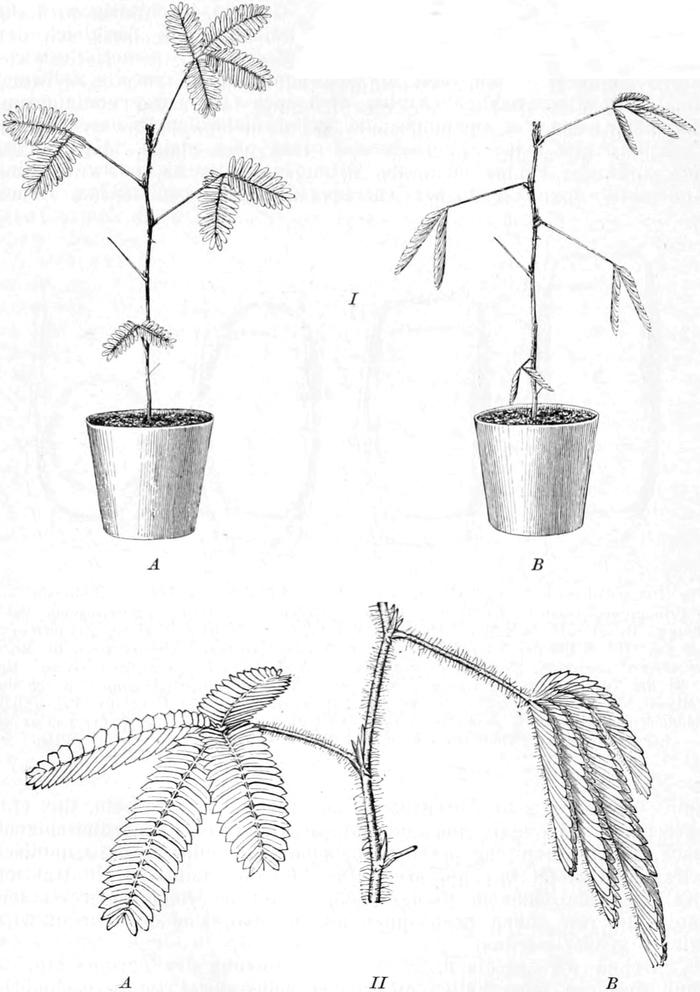
Fig. 104.
Mimosa pudica
.
I
Ganze Pflanze,
A
in Tagstellung,
B
in Nachtstellung.
II
A
Ein Zweig in ungestörtem Zustande (= Tagstellung),
B
ein Zweig desselben Stengels in gereiztem Zustande (= Nachtstellung).
II
Nach D
ETMER
.
⇒ GRÖSSERES BILD
Bei den Pflanzenbewegungen, die hier in Betracht kommen, findet nun ausschließlich dadurch eine Veränderung des Turgors statt, daß der Primordialschlauch bestimmter Zellen aus irgendeinem Grunde sich kontrahiert, in der Weise, daß Wasser aus der Zelle ausgepreßt wird, ein Vorgang, der nach einiger Zeit wieder aufhört, so daß der Turgor dann in demselben Maße, wie die Kontraktion nachläßt, von neuem steigt. So tritt also unter gewissen Umständen eine plötzliche Verminderung des Turgors und damit eine Verkleinerung der Zelle ein, und erst allmählich stellt sich der frühere Zustand wieder her.
Damit, auf diesem Prinzip basierend, an einer Pflanze eine bestimmt gerichtete Bewegung zustande kommen kann, müssen die Zellen, welche die Turgeszenzveränderungen erfahren, in bestimmter Weise angeordnet sein. Stellen wir uns vor, wir hätten schematisch zwei parallel aneinander gelagerte Reihen von Zellen, von denen die eine plötzlich den Turgor ihrer Zellen verringert, so daß die Zellen kleiner werden, während die Zellen der anderen Reihe ihren Turgor unverändert beibehalten, so ist die Folge, daß sich die erstere Reihe verkürzen muß. Dadurch kommt nach einfachen mechanischen Prinzipien eine Krümmung zustande, die ihre Konkavität an der verkürzten Seite hat. Die andere Seite ist dabei passiv etwas gedehnt worden. Findet daher später wieder eine allmähliche Steigerung des Turgors und eine Wiederverlängerung der Zellen auf der verkürzten Seite statt, so wird die Elastizität der andern Seite die Wiederstreckung wirksam mit unterstützen.
Solche Turgeszenzverminderung tritt nun bei vielen Pflanzen, sowohl spontan als auch durch Erschütterungen etc. hervorgerufen, an bestimmten Zellgruppen oft sehr plötzlich ein, und die Folge davon ist eine plötzliche Bewegung gewisser Pflanzenteile. Dabei ist in den meisten Fällen die Anordnung und Gestalt der Zellen, die durch Veränderung ihres Turgors die Bewegung hervorrufen, eine sehr komplizierte. Es sind in der Regel an der Basis der beweglichen Blätter oder Blattstiele kleine Knötchen oder „Polster“ entwickelt, deren Zellen ihren Turgor sehr schnell herabsetzen können. Eins der bekanntesten Beispiele dieser Art ist die Bewegung der Blattstiele bei der „sensitiven“ Mimosa pudica, die im „wachen“ Zustande, d. h. am Tage, ihre Blattstiele aufgerichtet und ihre Blättchen ausgebreitet (Fig. 104 I A und II A), im „Schlafzustande“, d. h. nachts, aber die Blattstiele gesenkt und die Blättchen nach oben zusammengefaltet hält (Fig. 104 I B und II B). Erschüttert man eine Mimose im wachen Zustande stark, so tritt bei Tage die Nachtstellung ganz plötzlich ein.
Auf demselben Prinzip beruhen die zahlreichen anderen Bewegungen der „sensitiven“ Pflanzen, wie der Blätter des Klees, der Staubfäden der Berberitze, der insektenfangenden Organe der „fleischfressenden“ Pflanzen u. a. m.
d) Bewegungen durch Veränderungen des spezifischen Gewichts.
Es gibt unter den wunderbaren, meist glasartig durchsichtigen Tierformen, welche eine pelagische Lebensweise in den oberen Schichten der Meere führen und in neuerer Zeit als „Plankton“ Objekt eingehender Forschung geworden sind, eine ganze Reihe von Tieren, die mit der merkwürdigen Fähigkeit begabt sind, ohne Gebrauch irgendwelcher Lokomotionsorgane im Meere langsam in die Höhe zu steigen oder in die Tiefe zu sinken. Es sind besonders die Gruppen der Radiolarien, Ctenophoren und Siphonophoren. Auch unter den einzelligen Organismen des süßen Wassers besitzen einige, wie Actinosphaerium, diese Fähigkeit. Da sich jede äußere Veranlassung, etwa Strömungen des Wassers etc., für dieses geheimnisvolle Schweben ausschließen läßt, und da eine Bewegung von besonderen Organen am Körper nicht daran beteiligt ist, so kann diese Bewegungsform nur auf Veränderungen des spezifischen Gewichts beruhen, und das ist in der Tat auch nachgewiesen worden.
Wie wir bereits früher gesehen haben, ist das Protoplasma der Zellen an sich stets etwas schwerer als Wasser[213]. Es kann also eine Zelle, die am Boden liegt, sich nur erheben, wenn im Protoplasma Stoffe auftreten und angehäuft werden, die spezifisch leichter sind als Wasser.
Es ist bekannt, daß gewisse Rhizopoden des Süßwassers, besonders die mit zierlichem Gehäuse versehenen Arcellen und Difflugien, die gewöhnlich am Boden der Pfützen und Teiche zwischen Schlammteilchen und faulen Blättern umherkriechen und spezifisch schwerer sind als Wasser, sich aktiv erheben können, indem sie eine Kohlensäureblase in ihrem Protoplasmakörper entwickeln und, wenn diese groß genug geworden ist, wie ein kleiner Luftballon an die Oberfläche steigen, eine Tatsache, die ENGELMANN[214] zuerst genauer untersucht hat und die jedem, der an einzelligen Organismen des Süßwassers eingehendere Studien gemacht hat, wohlbekannt ist. Man kann bisweilen in einem Kulturgefäß, wenn bestimmte Bedingungen die Entwicklung einer Kohlensäureblase im Protoplasma der Difflugien begünstigen, ein epidemisches Aufsteigen der Individuen vom Boden nach der Oberfläche beobachten. Wird die Kohlensäure dann durch Diffusion wieder abgegeben, so sinken die Difflugien wieder zu Boden. Dadurch kann in der Natur ein ganz beträchtlicher Standortwechsel entstehen, der, wenn die Protisten einmal unter ungünstige Lebensbedingungen geraten sind, unter Umständen großen Nützlichkeitswert für sie gewinnen kann.
Auf ähnliche Weise kommt das Steigen und Sinken der Radiolarien und aller Wahrscheinlichkeit nach auch der Ctenophoren und mancher anderen pelagischen Tiere zustande. Thalassicolla nucleata z. B. ist ein großes kugelrundes Radiolar von 3–4 mm Größe, das eine einzige Zelle repräsentiert, deren Kern, von Protoplasma umgeben, in einer runden „Zentralkapsel“ gelegen ist (Fig. 105). Das gesamte extrakapsuläre Protoplasma ist von unzähligen Vakuolen durchsetzt, so daß es wie eine Schaummasse aussieht, die nach außen hin durch eine solide Gallertschicht vom Meerwasser abgegrenzt ist. Diese Vakuolenschicht ist derjenige Bestandteil der Zelle, der spezifisch leichter ist als das Meerwasser und die ungestörte Thalassicolla an der Oberfläche des Meeres schwebend erhält[215]. Man kann sich davon durch vivisektorische Ausschaltung der einzelnen Bestandteile der Thalassicollenzelle, also durch Abtragung der Gallertschicht, durch Isolierung der Vakuolenschicht und Exstirpation der Zentralkapsel mit ihrem Inhalt leicht überzeugen. Alle Bestandteile sinken isoliert stets im Meerwasser zu Boden; nur die Vakuolenmasse bleibt an der Oberfläche schweben und kehrt beim Untertauchen immer hierher zurück[216]. Dementsprechend beginnt die ganze Thalassicolla, sobald die Vakuolenschicht durch Zerplatzen der Vakuolen zusammenschmilzt, wie das infolge von Reizung, in der Natur speziell von heftigem Wellenschlag, stattfindet, zu sinken. Dann fällt die Zelle in ruhigere Tiefen und ist so vor gänzlicher Zerstörung geschützt, denn die Vakuolenschicht kann wieder regeneriert werden, und indem sie an Volumen zunimmt, steigt die Thalassicolla bei ruhigem Wetter aus ihrer sicheren Tiefe wieder in die sonnige Höhe. Die große Bedeutung dieser Bewegungsart für das Leben der pelagischen Organismen liegt hiernach auf der Hand.
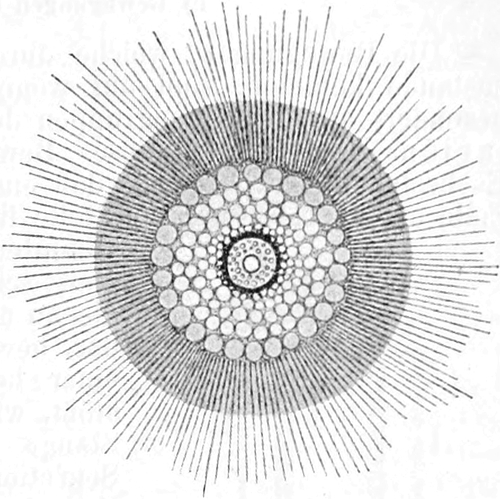
Fig. 105.
Thalassicolla nucleata
, eine kugelförmige Radiolarienzelle im Querschnitt. In der Mitte der von schwarzem Pigment umgebenen Zentralkapsel liegt der bläschenförmige Zellkern. Die Zentralkapsel ist umgeben von der Vakuolenschicht, ehe von einer Gallertzone eingehüllt wird und durch die letztere hindurch sonnenstrahlenartig fadenförmige Pseudopodien entsendet.
Es fragt sich aber nunmehr, wodurch der Inhalt der Vakuolen spezifisch leichter wird als das umgebende Meerwasser. Die Bedingungen für die Entstehung der Vakuolen, deren Neubildung man an jeder isolierten Zentralkapsel leicht beobachten kann, liegen, wie wir wissen, darin, daß sich im Protoplasma zerstreut osmotisch wirksame Stoffe anhäufen, welche bewirken, daß Wasser von außen her zu ihnen durch das Protoplasma hereintritt. In demselben Maße wie die Bildung und Konzentration der osmotisch wirksamen Stoffe im Protoplasma zunimmt, wird die Größe der Vakuolen wachsen, denn es muß stets ein Ausgleich des osmotischen Drucks zwischen der Vakuolenflüssigkeit und dem umgebenden Meerwasser stattfinden, d. h. die Vakuolenflüssigkeit muß stets dieselbe Anzahl von Molekülen in sich gelöst enthalten wie das Meerwasser. Wir werden aber annehmen müssen, daß in der Vakuolenflüssigkeit, wenn auch die gleiche Anzahl von Molekülen, so doch Moleküle anderer Stoffe gelöst sind, als im Meerwasser. Wenn wir uns daher vorstellen, daß ein Teil der in der Vakuolenflüssigkeit gelösten Stoffe ein sehr geringes spezifisches Gewicht hat, so wird es verständlich, wie der Vakuoleninhalt im ganzen auch spezifisch leichter sein kann als das umgebende Meerwasser. In der Tat hat es K. BRANDT[217] vor kurzem höchst wahrscheinlich gemacht, daß es auch hier die vom Protoplasma produzierte Kohlensäure ist, die, in der Vakuolenflüssigkeit gelöst, das spezifische Gewicht derselben unter das des Meerwassers herabdrückt. Ist daher die Vakuolenschicht bis zu einem gewissen Grade entwickelt, so wird auch das spezifische Gewicht der ganzen Radiolarienzelle geringer sein als das des Meerwassers, d. h. die Radiolarienzelle wird an der Oberfläche schweben. Wird die Masse der Vakuolenschicht durch Zerplatzen der Vakuolen verringert, oder wird die Produktion der Kohlensäure in der Kälte, wo der Stoffwechsel auf ein Minimum herabsinkt, stark vermindert, so werden die Radiolarien unter Umständen wieder in die Tiefe sinken.
e) Bewegungen durch Sekretion.
Die Bewegungen, welche durch Sekretion von seiten der Zelle zustande kommen, sind auf wenige Organismengruppen beschränkt, besonders auf die Algengruppen der Desmidiaceen und Oscillarien. Das Prinzip dieses Bewegungsmodus ist überaus einfach. Es besteht lediglich darin, daß eine auf einer Unterlage aufliegende Zelle an einer bestimmten Stelle ihrer Oberfläche und nach einer bestimmten Richtung hin eine Sekretmasse, meist schleimiger Natur, hervorquellen läßt, die an der Unterlage festklebt, so daß sich der bewegliche Zellkörper dadurch nach einer bestimmten Richtung hin vorwärts stößt, wie der Fischer sein Boot mit einer Stange vom Grunde abstößt. Dauert die Sekretion kontinuierlich an, so gleitet die Zelle langsam auf der Unterlage dahin.
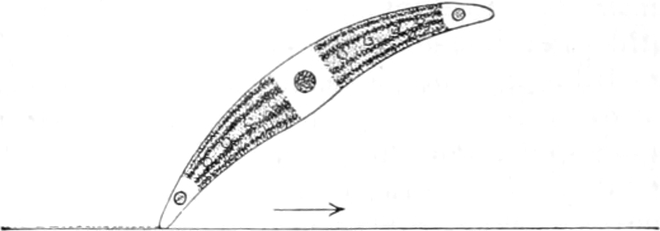
Fig. 106.
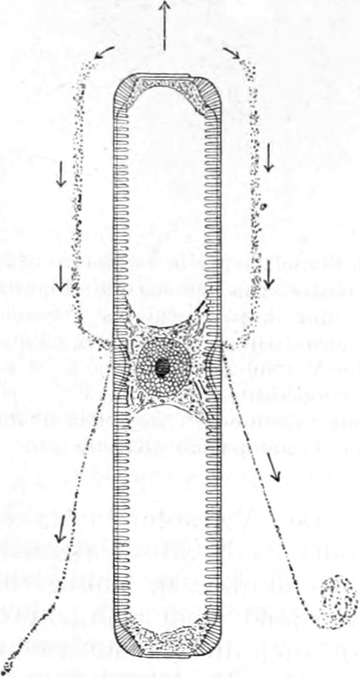
Fig. 107.
Fig. 106. Closterium, eine Desmidiacee, die sich durch Sekretion von Schleim auf der Unterlage fortschiebt. Das nicht sezernierende Ende pendelt frei im Wasser.
Fig. 107. Diatomee mit ausgestoßenen Schleimfäden. Nach BÜTSCHLI.
In dieser Weise bewegen sich z. B. die Desmidiaceen. Das mondsichelförmige Closterium (Fig. 106), das wir schon bei der Betrachtung der BROWNschen Molekularbewegung kennen lernten, sezerniert an den beiden Enden seines einzelligen Körpers einen schleimigen Stoff. Während es dabei mit dem einen Ende an der Unterlage haftet, schwebt das andere Ende frei pendelnd im Wasser, so daß der ganze Zellkörper unter einem bestimmten Winkel schräg von der Unterlage nach oben aufgerichtet steht. Mit dem anhaftenden Ende schiebt sich das Closterium, wie KLEBS[218] und ADERHOLD[219] gezeigt haben, durch Ausscheiden einer schleimigen Sekretmasse langsam vorwärts (Fig. 106), indem es seinen Neigungswinkel zur Unterlage im wesentlichen beibehält. Ab und zu wechselt es beim Vorwärtsgleiten mit seinen beiden Polen ab, indem der freipendelnde Pol sich senkt, anhaftet und sezerniert, während der vorher anhaftende Pol sich erhebt und frei pendelt. So rückt die Alge allmählich auf ihrer Unterlage vorwärts.
Ueber die Bewegung der Diatomeen, jener kleinen, braunen, schiffchen- oder stäbchenförmigen Algen, die mit einer äußerst zierlichen Kieselschale versehen und im Süß- und Seewasser in ungeheurer Formenzahl verbreitet sind, ist bereits eine kaum noch übersehbare Literatur entstanden. Man sieht diese einzelligen Wesen, wenn man sie in einem Wassertropfen auf einem Objektträger beobachtet, in der Richtung ihrer Längsachse manchmal langsamer, manchmal schneller auf ihrer Unterlage in eigentümlicher, zögernder Weise vorwärtsgleiten und dann bisweilen wieder mit dem entgegengesetzten Pol voran nach entgegengesetzter Richtung zurückgehen, ohne daß es gelingt, irgend welche Bewegungsorgane an dem Körper zu entdecken. Die zahllosen Forscher, die, wie MAX SCHULTZE, ENGELMANN u. a., sich mit dieser anmutigen Bewegung beschäftigt haben, sind zu den auseinanderweichendsten Ansichten über ihre Entstehung gekommen. Neuerdings schien es nach den Arbeiten von BÜTSCHLI[220] und LAUTERBORN[221], als ob sie ebenfalls auf dem gleichen Prinzip der Ausstoßung eines schleimigen Sekrets beruhte. In der Tat gelang es BÜTSCHLI und LAUTERBORN, zu zeigen, daß gewisse Diatomeenformen von einer Gallerthülle umgeben sind und eigentümliche Sekretfäden ausstoßen, die durch anhaftende Tuschekörnchen sichtbar gemacht werden können (Fig. 107). Allein die sehr eingehenden Untersuchungen von O. MÜLLER[222] in der letzten Zeit haben ergeben, daß diese Fäden jedenfalls nur eine untergeordnete Bedeutung für die Fortbewegung der Diatomeen haben, und daß der Bewegungsmodus dieser kleinen Algenzellen ein viel komplizierterer sein dürfte, der sich möglicherweise mehr der Bewegung durch Protoplasmaströmung anschließt.
Von den langen fadenförmigen Oscillarien, die aus vielen, in einer Reihe hintereinander angeordneten Zellen bestehen, und die als blaugrüne Fäden in gleicher Weise langsam im Wasser kriechen, wie die Diatomeen, scheint es indessen, daß sie sich wirklich durch Ausscheidung eines Sekrets auf der Unterlage vorwärts schieben, und von den Gregarinen (Fig. 27 b p. 92), jenen parasitär lebenden einzelligen Organismen, die ebenfalls ohne besondere Bewegungsorgane sehr langsam gleitende Bewegungen ausführen, hat SCHEWIAKOFF in neuerer Zeit das gleiche gezeigt.
f) Bewegungen durch Wachstum.
Die Bewegungen, die mit dem Wachstum der Zellen verbunden sind, brauchen wir nur kurz zu berühren, denn ihr Prinzip bedarf weiter keiner Erläuterung. Mit jedem Wachstum gehen Bewegungen einher, denn indem eine Zelle an Volumen zunimmt, dehnt sie sich aus. Die Wachstumsbewegungen sind also aller lebendigen Substanz eigen, aber sie verlaufen fast immer so langsam, daß man sie mit den Augen kaum verfolgen kann. Vergleicht man dagegen die wachsenden Objekte innerhalb größerer Zeiträume mit ihrem Anfangsstadium, betrachtet man erst das keimende Samenkorn und dann die Pflanze, die sich daraus entwickelt hat, mit allen ihren Zweigen, Blättern und Blüten, so liegt es auf der Hand, daß dabei umfangreiche Bewegungen stattgefunden haben, durch die das Baumaterial an die Stellen, wo es angelagert worden ist, hintransportiert werden mußte. Besonders deutlich erkennt man auch die Wachstumsbewegungen an langen Pflanzenstengeln oder Ranken, wenn die Zellen auf der einen Seite schneller wachsen oder sich schneller vermehren als auf der anderen Seite, so daß auf diese Weise Krümmungen zustande kommen. Am augenfälligsten aber sind die durch das Wachstum bedingten Bewegungen in den Fällen, wo die beim Wachsen produzierte mechanische Energie nicht dauernd frei abgegeben, sondern in potentieller Form aufgehäuft und schließlich durch irgendeinen auslösenden Reiz plötzlich in kinetische Energie übergeführt wird, wie das am schönsten bei den Samen und Früchten gewisser Pflanzen, z. B. von Impatiens, hervortritt, die bei Berührung plötzlich mit einer Schleuderbewegung aufplatzen und ihren Inhalt herausschnellen. Es ist nicht nötig, auf den Modus der Wachstumsbewegungen noch weiter einzugehen, da ihr Prinzip ja ohne weiteres klar ist, und da sie einem auf Schritt und Tritt in der lebendigen Natur begegnen. Daß auch die Wachstumsvorgänge gewaltige Energiewerte erzeugen, wird am anschaulichsten, wenn man daran denkt, wie Bäume, die zwischen Felsen wachsen, mit ihren Wurzeln große Steinmassen auseinanderzusprengen vermögen.
g) Bewegungen durch Kontraktion und Expansion.
Die Bewegungen schließlich, die durch Kontraktion und Expansion des Zellkörpers entstehen und die man gewöhnlich kurz als „Kontraktionsbewegungen“ bezeichnet, unterscheiden sich von allen anderen organischen Bewegungsmodi dadurch, daß sie auf Oberflächengestaltsveränderungen der lebendigen Substanz selbst beruhen, die mit gegenseitigen Lageverschiebungen ihrer Teilchen verbunden sind, und zwar verlaufen alle Kontraktionsbewegungen in zwei Phasen, in dem Wechsel zwischen der „Kontraktionsphase“ und der „Expansionsphase“. Bei der Kontraktion verlagern sich die Teilchen der lebendigen Substanz so gegeneinander, daß die Masse eine geringere Oberfläche annimmt, bei der Expansion dagegen so, daß dieselbe Masse sich auf eine größere Oberfläche verteilt. Nur der Wechsel zwischen Kontraktions- und Expansionsphase ermöglicht dauernde Bewegungen.
Es liegt auf der Hand, daß nur Körper von mehr oder weniger flüssiger Beschaffenheit eine solche Bewegung zeigen können, bei der eine Veränderung der Oberflächengröße durch Umlagerung der einzelnen Teilchen gegeneinander zustande kommt. Nur ein Flüssigkeitstropfen kann seine Oberfläche durch Umlagerung seiner Teilchen verringern oder vergrößern, indem er kuglig wird oder sich ausbreitet, je nachdem seine „Oberflächenspannung“ ringsherum gleich ist oder an einzelnen Stellen größer, an anderen geringer wird. Ein fester und starrer Körper, selbst wenn er elastisch ist, kann Kontraktionsbewegungen dieser Art nicht hervorbringen, da seine Teilchen ihre Lage nicht untereinander vertauschen können. Es ist daher für das Zustandekommen der Kontraktionsbewegungen von fundamentaler Bedeutung, daß die lebendige Substanz eine flüssige Konsistenz besitzt. Wie wir schon früher fanden, ist in der Tat alle lebendige Substanz mehr oder weniger flüssig, ein Umstand, der durch den hohen Prozentgehalt an Wasser bedingt ist, und es ist daher die verbreitete Auffassung, daß überhaupt alle lebendige Substanz „Kontraktilität“ besitzt, d. h. Kontraktionsbewegungen auszuführen imstande ist, durchaus begründet, wenn wir auch viele Zellen kennen, wie gewisse Algenzellen, Bakterienzellen etc., die, trotzdem sie ein intensives Leben besitzen, doch, weil sie von einer starren Membran umgeben sind, äußerlich keine Kontraktionsbewegungen zum Ausdruck bringen können. Die Kontraktilität, d. h. die Fähigkeit, Kontraktionsbewegungen auszuführen, ist aber eine allgemeine Eigenschaft aller lebendigen Substanz und erfordert daher eingehendes Interesse.
Wir können unter den Bewegungsarten, die durch Kontraktion und Expansion nach dem eben charakterisierten Prinzip zustande kommen, je nach der eigentümlichen Differenzierung des Substrats, an dem sie beobachtet werden, drei Gruppen unterscheiden, die wir bezeichnen als:
Amöboide Bewegung (Protoplasmaströmung), Muskelbewegung (Bewegung der glatten und quergestreiften Muskelfasern), Flimmerbewegung (Geißelbewegung, Wimperbewegung).
** *
Die amöboide Bewegung, die ursprünglichste Form der Kontraktionsbewegungen, finden wir überall da, wo es sich um nackte Protoplasmamassen handelt, um Zellen, deren Protoplasmakörper von keiner Zellmembran umschlossen ist oder, wie bei den Pflanzenzellen, in der Zellmembran freien Raum zur Bewegung besitzt. Es sind das also vor allem die mannigfaltigen Vertreter der großen Protistengruppe der Rhizopoden (Fig. 108 u. 111), ferner im tierischen Zellenstaat die Leukocyten und amöboiden Wanderzellen der verschiedensten Art (Fig. 109), sowie die amöboiden Eizellen gewisser Tiere, wie der Schwämme (Fig. 22 a p. 88), ferner die Pigmentzellen der verschiedensten Organe[223] (Fig. 110), die Darmepithelzellen (Fig. 48 p. 172) und schließlich die verschiedenartigsten Pflanzenzellen (Fig. 29 a, b, c p. 94 u. Fig. 112 p. 282). Als Typus kann uns die Bewegung der Amöben selbst dienen (Fig. 108), jener niedrigsten aller Lebensformen, deren formwechselnder Zellkörper bereits alle Rätsel des Lebens in sich birgt. Mit einer Pipette in einem Wassertropfen vom Grunde eines Teiches genommen und auf einer Glasplatte unter das Mikroskop gebracht, stellt die Amöbenzelle ein kleines graues, halbdurchscheinendes Tröpfchen von mehr oder weniger ausgesprochener Kugelform vor, in dessen zentraler Masse der Zellkern und meist eine kontraktile Vakuole von einem mehr oder weniger körnigen „Endoplasma“ umgeben liegt, während die peripherische Schicht von einem mehr hyalinen „Exoplasma“ gebildet wird. Behalten wir diesen Tropfen lebendiger Substanz einige Zeit im Auge, so sehen wir, wie sich an irgendeiner Stelle der Oberfläche die Kugelmasse vorwölbt, so daß über der Kugeloberfläche ein lappenförmiger Vorstoß erscheint, der nun immer größer wird und sich immer weiter und weiter ausstreckt, indem immer mehr Protoplasma in ihn nachfließt, ein Vorgang, der von den peripherischen Teilen aus nach dem Zentrum hin um sich greift, so daß eine dauernde Strömung vom Zentrum nach der Peripherie in den Ausläufer, das sogenannte „Pseudopodium“, hinein stattfindet (Fig. 108). Häufig fließt die ganze Protoplasmamasse der Amöbe in diesen einen lappigen Vorstoß nach, so daß der Amöbenkörper eine einzige langgestreckte Masse bildet, wie man das besonders bei der Amoeba limax beobachtet; häufig aber wird die zentrifugale Protoplasmaströmung des eben gebildeten Pseudopodiums unterbrochen, während sich gleichzeitig an irgendeiner anderen Stelle der Oberfläche ein zweites Pseudopodium in gleicher Weise durch zentrifugales Vorfließen des Protoplasmas in das Medium hinein bildet, und diesem kann wieder ein drittes folgen, so daß die Amöbe nach den verschiedensten Richtungen hin ihre Substanz vorfließen läßt, bald hierhin, bald dorthin, und ihre Oberfläche auf diese Weise bedeutend vergrößert. Dieses „Ausstrecken der Pseudopodien“, das Vorfließen der lebendigen Substanz in das Medium hinein, repräsentiert die Expansionsphase. Während sich ein neues Pseudopodium ausstreckt, fließt gewöhnlich das Protoplasma aus einem anderen wieder von der Peripherie her nach dem Zentrum zurück und liefert so das Material für ein neues; das alte Pseudopodium wird eingezogen. Diese „Einziehung der Pseudopodien“, das zentripetale Zurückfließen des Protoplasmas und die damit verbundene Wiederverringerung der Oberflächengröße repräsentiert die Kontraktionsphase. Ziehen sich alle Pseudopodien ein, so nimmt die Amöbenzelle wieder Kugelform an. Die Kugelform ist also Ausdruck vollkommenster Kontraktion bei nackten Protoplasmamassen. Während des ungestörten Zustandes treten aber gewöhnlich bei derselben Amöbe gleichzeitig an verschiedenen Stellen der Oberfläche bald Kontraktionen, bald Expansionen auf. Eine Präformation der Pseudopodien ist also nicht vorhanden; es fließt bald hier, bald dort Substanz vor, mischt sich fortwährend durcheinander und fließt wieder zurück, und dies wechselvolle Spiel ist die amöboide Bewegung.
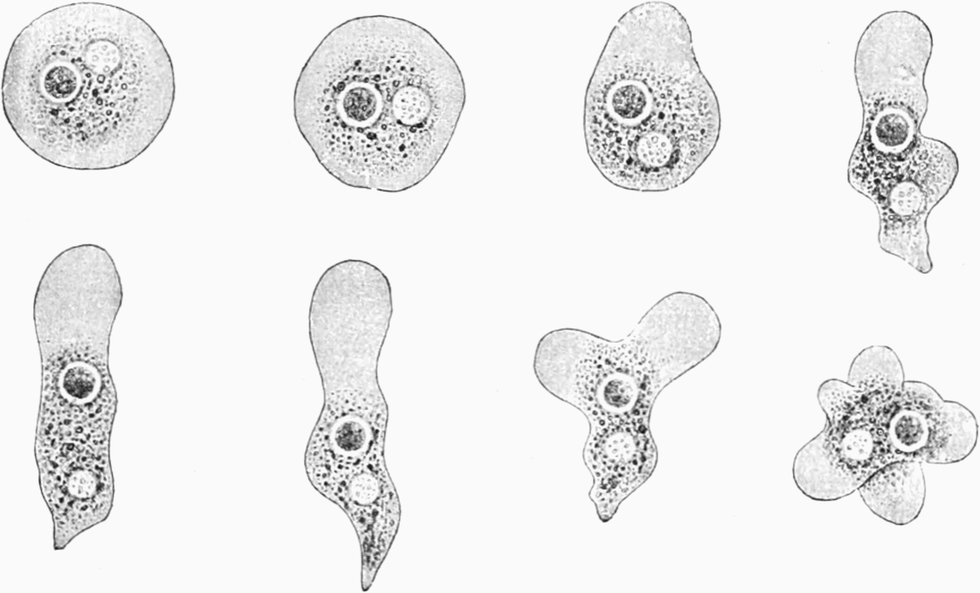
Fig. 108.
Amöbe in acht aufeinanderfolgenden Stadien der Bewegung
.
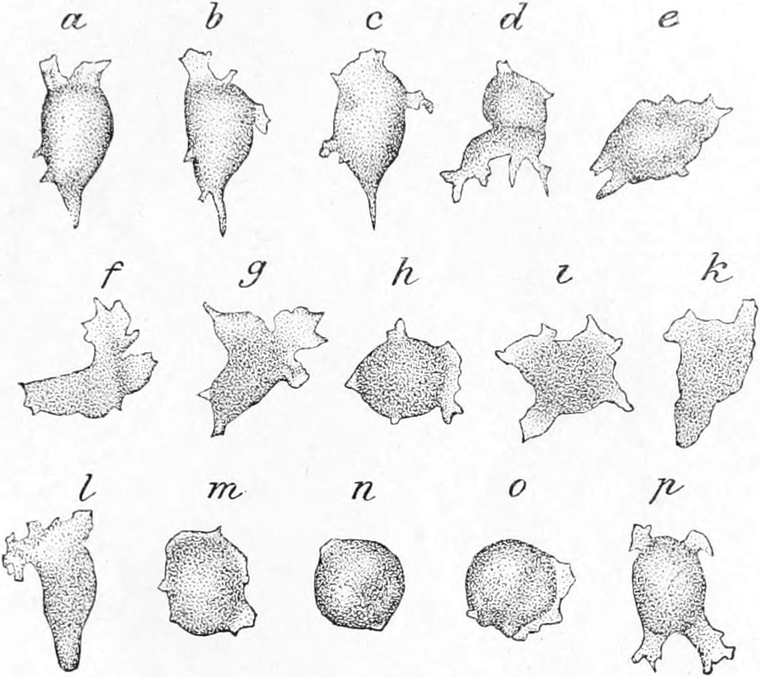
Fig. 109.
Leukocyt
(weißes Blutkörperchen)
vom Frosch in verschiedenen Bewegungszuständen
. Nach E
NGELMANN
.
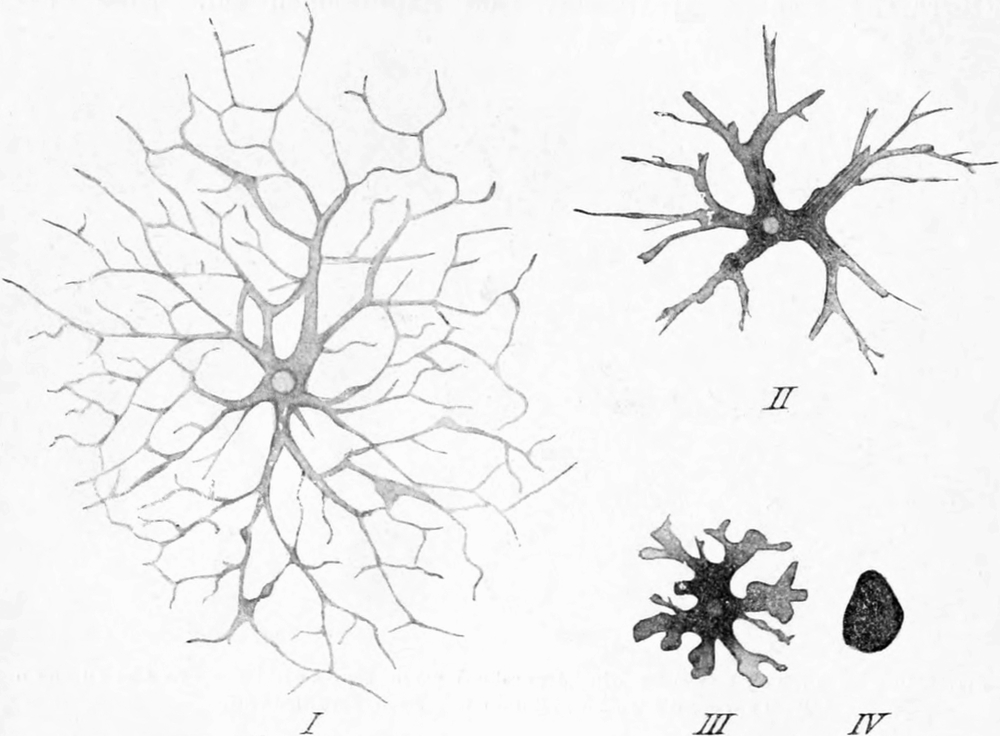
Fig. 110.
Pigmentzellen
aus der Haut des Frosches.
I
ausgebreitete,
II
schwach kontrahierte,
III
stärker kontrahierte,
IV
vollkommen kontrahierte Pigmentzelle. Der helle Fleck im zentrales Zellkörper ist der Zellkern.
Die Form der Pseudopodien ist bei den verschiedenen amöboiden Protoplasmamassen überaus verschieden, je nach der speziellen Konsistenz, Zusammensetzung etc. der lebendigen Substanz. Wie wir bereits gesehen haben[224], finden wir z. B. unter der Formenfülle der Rhizopodenzellen kurze stumpfe, lappig zerschlitzte, dicke fingerförmige, dünne dornenförmige, gerade strahlenartige, lange fadenförmige, baumartig verästelte und netzartig verzweigte Pseudopodienformen. Aber alle diese durch zahllose Uebergänge miteinander verbundenen Pseudopodienformen entstehen auf die gleiche Weise, indem das Protoplasma vom zentralen Zellkörper in zentrifugaler Richtung in das Medium hinein vorströmt. Demgemäß muß es bei den Formen mit langen fadenförmigen Pseudopodien, wie den Foraminiferen (z. B. Orbitolites, Fig. 111) einen sehr langen Weg zurücklegen vom Zentrum bis zur Spitze eines sich immer weiter und weiter verlängernden Pseudopodienfadens, so daß man auf diesen feinen Fäden das Protoplasma mit seinen Körnchen etc. unter dem Mikroskop strömen sieht, wie das Wasser eines langsam fließenden Stromes; ein äußerst anmutiges Phänomen, das seine Anziehungskraft auf den Beobachter immer wieder von neuem ausübt und von DUJARDIN[225], MAX SCHULTZE[226] und HAECKEL[227] als „Körnchenströmung“ oder „Protoplasmaströmung“ in unübertrefflicher Weise geschildert worden ist. Bei der Einziehung dieser langen, fadenförmigen Pseudopodien müssen dann die Protoplasmateilchen wieder den gleichen Weg in umgekehrter, also zentripetaler Richtung zurücklegen. Betrachtet man Pseudopodienfäden, die schon ziemlich weit und längere Zeit ausgestreckt sind, so bemerkt man auf ihnen stets zweierlei Strömungen, eine zentrifugale und eine zentripetale, die erstere an dickeren Pseudopodien deutlich in der Achse, die letztere an der Peripherie des Pseudopodienstranges. Je nachdem die erstere oder die letztere überwiegt, verlängert sich oder verkürzt sich allmählich das Pseudopodium. Sind beide gleich stark, so bleibt das Pseudopodium bei gleicher Länge ausgestreckt. So können wir gerade bei den langen, fadenförmigen Pseudopodien der Foraminiferen, wie Orbitolites (Fig. 111), die Expansions- und Kontraktionsbewegungen außerordentlich leicht in ihren Einzelheiten studieren. Immer besteht die Expansionsphase, d. h. die Ausstreckung der Pseudopodien, in einem zentrifugalen Vorfließen der lebendigen Substanz in das umgebende Medium hinein, die Kontraktionsphase, d. h. die Einziehung der Pseudopodien dagegen in einem zentripetalen Zurückfließen von der Peripherie nach dem zentralen Zellkörper. Die Expansionsphase ist charakterisiert durch Vergrößerung der Oberfläche, die Kontraktionsphase durch Streben nach der Kugelgestalt.
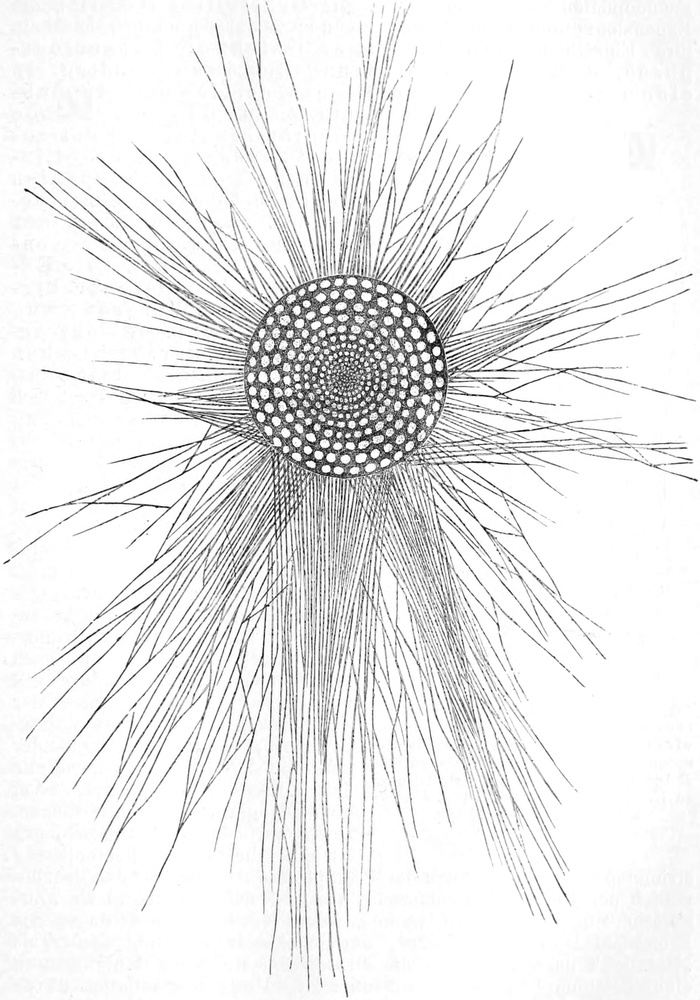
Fig. 111.
Orbitolites complanatus
, eine Rhizopodenzelle aus dem Roten Meer (kleines Exemplar, ca. 40mal vergr., natürl. Größe der ausgewachsenen Exemplare durchschnittlich 5 mm). Der zentrale Protoplasmakörper steckt in einer runden, scheibenförmigen Kalkschale, die aus zahllosen, im wesentlichen zu konzentrischen Ringen angeordneten Kammern besteht. Das Protoplasma jeder Kammer enthält einen oder wenige Zellkerne. An der Peripherie der Kalkschale treten zahlreiche feine, gerade Pseudopodienfäden heraus, die bei großen Exemplaren oft fast 20 mm Länge erreichen, sich mehrfach verzweigen und auch untereinander verschmelzen. Auf den Pseudopodien sieht man die Protoplasma- und Körnchenströmung in schönster Entwicklung.
⇒ GRÖSSERES BILD
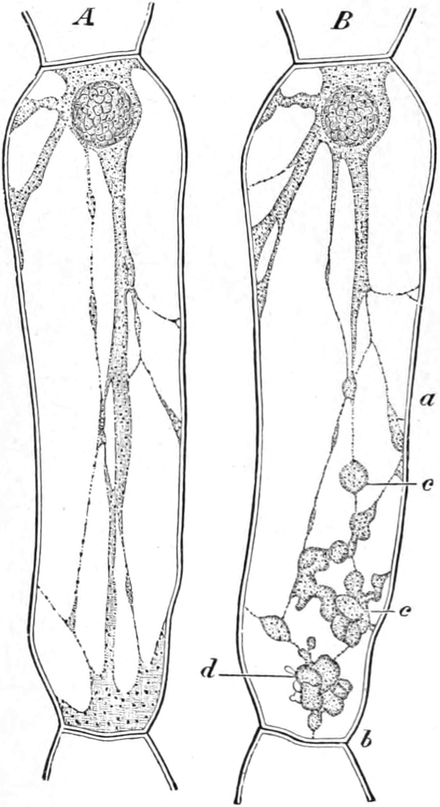
Fig. 112.
Zelle aus den Staubfädenhaaren von Tradescantia virginica
.
A
Ruhige Protoplasmaströmung auf den Protoplasmasträngen.
B
Das Protoplasma hat sich nach Reizung zu Klumpen und Kugeln bei
a
,
b
,
c
,
d
kontrahiert. Nach K
ÜHNE
.
Demselben Schema reiht sich auch die Protoplasmaströmung in den Pflanzenzellen an. Eine Zelle aus den Staubfädenhaaren von Tradescantia virginica stellt eine zylindrische, ringsherum geschlossene Zellulosekapsel vor (Fig. 112 A), in welcher der protoplasmatische Zellkörper mit seinem Zellkern eingeschlossen ist. Das Protoplasma bildet an der Innenwand den kontinuierlichen „Primordialschlauch“, von dem aus nach verschiedenen Richtungen durch das mit Zellsaft gefüllte Lumen der Zellulosekapsel sich Protoplasmastränge ziehen, die miteinander anastomosieren und an einer Stelle den Zellkern beherbergen. Auf diesen langen Protoplasmasträngen, sowie auf dem Primordialschlauch ist eine beständige Protoplasmaströmung sichtbar, die genau der Protoplasmaströmung auf den Pseudopodien der Rhizopoden entspricht und von den Botanikern als „Zirkulation“ bezeichnet wird, wenn auf den verschiedenen Strängen das Protoplasma in ungeordneter, unregelmäßiger Richtung fließt, als „Rotation“ dagegen, wenn die Protoplasmaströmung dauernd nach einer bestimmten Richtung geordnet ist. Diese Konstellation würde also der Protoplasmabewegung einer Rhizopodenzelle, wie etwa Orbitolites, entsprechen in ungestörtem Zustande, in dem bei lang ausgestreckten Pseudopodien das Protoplasma dauernd sowohl in zentrifugaler wie in zentripetaler Richtung strömt, d. h. in dem die Kontraktionsphase und Expansionsphase gleich stark entwickelt sind. In der Pflanzenzelle ist nur durch Verteilung des ganzen Protoplasmas auf einzelne netzförmig anastomosierende Stränge ein so kompliziertes System von Strömungen entstanden, daß man nicht mehr gut von einer zentrifugalen und zentripetalen Strömung sprechen kann, wie das in gleicher Weise bei großen Rhizopoden mit netzartig verzweigten und anastomosierenden Pseudopodien der Fall ist, oder etwa bei den Myxomycetenplasmodien, deren ganzer Körper sich zu einem reichverzweigten Pseudopodiennetzwerk aufgelöst hat. Ein deutlicheres Hervortreten der Kontraktionsphase ist aber sehr leicht durch Reize zu erzielen. Es ist wie bei den Rhizopoden ebenfalls dadurch charakterisiert, daß das Protoplasma sich zu Kugeln zusammenballt (Fig. 112 B), die ineinander fließen und unter Umständen schließlich eine große klumpige Masse um den Kern herum bilden. Hier haben wir also das vollkommene Analogon für die Kontraktionsphase der Rhizopoden, wo sich die Pseudopodien einziehen, so daß der Körper eine mehr oder weniger kuglige Gestalt annimmt. Die Einzelheiten der Protoplasmaströmung sind also bei den Pflanzenzellen genau dieselben wie bei den Rhizopoden, und bereits MAX SCHULTZE[228] hat die Analogie der Protoplasmabewegung in beiden Fällen sehr eingehend erörtert.
Die Arbeit, die durch die Protoplasmabewegung geleistet werden kann, ist bis jetzt noch nicht ermittelt worden, doch scheint die Energieentwicklung bei der amöboiden Protoplasmabewegung nicht gerade bedeutend zu sein.
** *
Die Muskelbewegung ist die spezifische Bewegungsform des tierischen Organismus, durch die er sich von allen Pflanzen augenfällig unterscheidet. Alle groben und schnellen Massenbewegungen des ganzen tierischen Körpers oder einzelner Organsysteme, welche die naive Betrachtungsweise des Volkes verführt haben, dem Tiere eine höhere Stufe des Lebens zuzuschreiben als der Pflanze, die man der leblosen Natur für viel näher stehend betrachtet als den Tieren, alle diese auffälligen Bewegungen, die von sämtlichen Lebensäußerungen am meisten den Eindruck des Lebendigen hervorrufen, beruhen auf Kontraktion von Muskelfasern.
Der amöboiden Protoplasmabewegung gegenüber ist die Muskelbewegung besonders dadurch charakterisiert, daß sie eine in ihren einzelnen Momenten räumlich „geordnete“ Bewegung ist, insofern sich die Teilchen einer Muskelfaser nur in einer bestimmten Richtung verschieben. Freilich kann man sagen, daß auf einem langen, geraden, fadenförmigen Pseudopodium die Teilchen ebenfalls in einer bestimmten Richtung fließen, aber diese Richtung ist keine dauernde; denn indem sich das Pseudopodium einzieht, vermischen sich die Teilchen wieder mit den anderen und gehen nach allen möglichen Richtungen auseinander. Dem gegenüber sind die Teilchen, die in einer Muskelfaser die Träger der Kontraktionsbewegungen sind, dauernd als besondere Gebilde im übrigen Zellprotoplasma vorhanden und können sich nicht ohne weiteres mit ihm vermischen. Wenn wir die ganze Muskelzelle „Muskelfaser“ nennen, so pflegen wir die besonders differenzierten kontraktilen Streifen in ihr als „Primitivfibrillen“ zu bezeichnen, und diese Primitivfibrillen können im Protoplasma der Muskelfaser, das man mit Rollett auch kurz „Sarkoplasma“ nennen kann, in der verschiedensten Weise angeordnet, aber sämtlich in gleicher Richtung eingebettet liegen. Die kontraktilen „Fibrillen“ der Muskelfaserzelle stellen also besonders differenzierte Organoide des Zellprotoplasmas vor.
Nach dem verschiedenartigen Bau der kontraktilen Muskelfibrillen unterscheiden wir zwei Gruppen von Muskelfasern oder Muskelzellen, „glatte“ und „quergestreifte“. Bei den glatten Muskelfasern sind die Fibrillen, die im Sarkoplasma parallel untereinander eingebettet liegen, völlig homogene Fäden, bei denen jeder Querschnitt gleich jedem anderen ist. Die quergestreiften Muskelfasern dagegen enthalten Fibrillen, welche von einem Ende bis zum anderen in viele Segmente eingeteilt sind, die alle einen übereinstimmenden, aber komplizierten Bau besitzen.
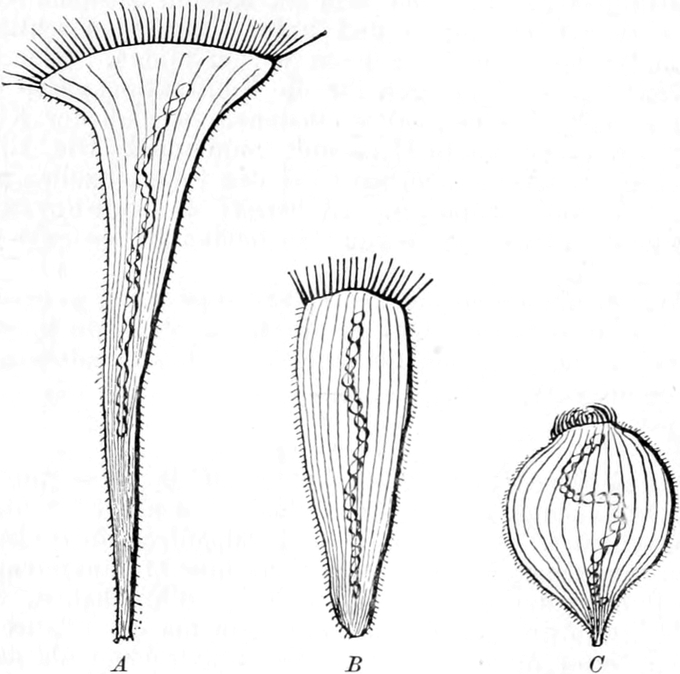
Fig. 113.
Stentor coeruleus, ein Wimperinfusorium mit zahlreichen, parallel verlaufenden Muskelfibrillen (Myoidfäden) im Exoplasma
.
A
ausgestreckt,
B
halbkontrahiert (beim freien Schwimmen),
C
vollständig kontrahiert.
Die einfachsten Formen der glatten Muskelzellen finden wir unter den Infusorien. Viele Wimperinfusorien, wie z. B. Stentor, repräsentieren eine solche Muskelzelle einfachster Art, indem ihr bewimperter Zellkörper in der äußeren Schicht seines Protoplasmas ungefähr parallel nebeneinander verlaufende glatte Muskelfibrillen, sogenannte „Myoide“ eingebettet enthält (Fig. 113). Andere Infusorien, vor allem die zierliche Vorticella, besitzen nur einen einzigen, aus mehreren Fibrillen zusammengekitteten glatten Muskelfaden, der aus dem Körper als dicker Strang heraustritt und, umgeben von einer elastischen Scheide, an deren Innenwand er in langgestreckten Spiraltouren angeheftet ist, dem Zellkörper als Stiel zum Festsetzen dient (Fig. 114). Bei den glatten Muskelzellen, die gewebebildend im Zellenstaat vereinigt sind, tritt der Protoplasmakörper gegenüber den kontraktilen Fibrillen sehr an Masse zurück. Entweder bildet er nur eine kleine Sarkoplasmamasse mit ihrem Zellkern, welche von einer langen, spindelförmigen Hülle kontraktiler Fibrillensubstanz eingeschlossen ist, wie z. B. bei den glatten Muskelzellen aus der Blase des Frosches (Fig. 115 a), oder er liegt als kleiner Zellkörper dem kontraktilen Fibrillenbündel seitlich in der Mitte an, wie etwa bei den Retraktorenmuskeln der Süßwasserbryozoen (Fig. 115 b).
Fig. 114. Vorticella, a ausgestreckt, b kontrahiert (der Stielmuskel ist in a und b nicht zu sehen), c Stielscheide mit Muskelfaden, stark vergrößert. Fig. 115. Glatte Muskelzellen, a aus der Blase des Frosches, b aus den Retraktorenmuskeln der Süßwasserbryozoen.
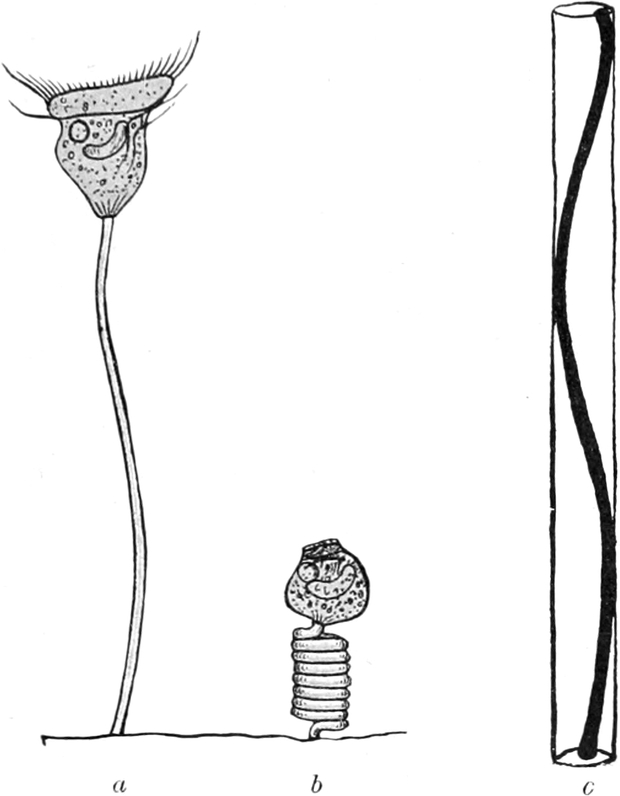
Der Bau der quergestreiften Muskelfasern ist bei weitem komplizierter. Als Typus der quergestreiften Muskelfaser, die ebenso wie die glatte in mannigfachen Modifikationen auftritt, kann uns die Insektenmuskelfaser dienen, deren Bau besonders durch die ausgezeichneten und ausgedehnten Untersuchungen von KRAUSE, HENSEN, ENGELMANN, ROLLETT, SCHÄFER und HÜRTHLE bis in seine feinsten Einzelheiten bekannt geworden ist. Die quergestreifte Muskelfaser der Insekten stellt eine lange dünne, zylindrische Zelle vor, bestehend aus dem „Sarkoplasma“, das nach außen hin von einer etwas dichteren Schicht, dem „Sarkolemm“, abgegrenzt ist und zahlreiche, in der Faserrichtung langgestreckte Zellkerne enthält (Fig. 116). In diesem Sarkoplasma eingebettet und parallel von einem bis zum anderen Ende der Faser hinziehend liegen die regelmäßig segmentierten Primitivfibrillen (Fig. 117 A). Betrachtet man die „Muskelsegmente“ einer Fibrille mit sehr starken Vergrößerungen, so findet man, daß sie alle den gleichen Bau besitzen, indem sich dieselbe Anordnung ihrer Inhaltsbestandteile in jedem Muskelsegment wiederholt. Jedes Segment ist nämlich von den beiden anliegenden Segmenten getrennt durch die sogenannte „Zwischenscheibe“ (Fig. 117 z) und enthält zwei verschiedene Substanzen, von denen die eine doppelt lichtbrechend oder „anisotrop“ ist und in der Mitte des Segmentes liegt (Fig. 117 q resp. q + m + q), während die andere einfach lichtbrechend oder „isotrop“ ist und in zwei Portionen die anisotrope Substanz begrenzt (Fig. 117 i). In der Mitte der anisotropen Schicht ist mehr oder weniger deutlich eine hellere Zone sichtbar, die als HENSENsche „Mittelscheibe“ bezeichnet wird (Fig. 117 B m). Bei vielen Muskelfasern verbreitet, aber nicht als konstanten Bestandteil aller Muskelfasern, finden wir schließlich eine oder zwei „Nebenscheiben“ (Fig. 117 B n) in die isotrope Substanz eingelagert. Als die allgemeinen Bestandteile des Muskelsegments kommen indessen für uns nur die anisotrope Schicht und die beiden sie begrenzenden isotropen Schichten in Betracht, von denen die anisotrope Substanz unter dem Mikroskop dunkler und stärker lichtbrechend, die isotrope Substanz heller und weniger stark lichtbrechend aussieht. Auf dem Querschnitt liegen in jeder Muskelfaser die gleichen Schichten der einzelnen Fibrillen in gleicher Ebene, so daß die ganze Muskelfaser regelmäßig gebändert oder „quergestreift“ ist (Fig. 116 A). Die quergestreiften Muskelfasern der Wirbeltiere erreichen oft eine ganz beträchtliche Länge, obwohl sie nur eine einzige vielkernige Zelle vorstellen. Die Muskelfasern aus den langen Skelettmuskeln des Menschen z. B. sind Fäden von über Dezimeter Länge, und jede Muskelfibrille in ihnen reicht von einem Ende bis zum anderen.
Fig. 116.
Quergestreifte Muskelfasern
.
A
zwei herausgeschnittene Stücke von Muskelfasern (links oben das Ende einer Faser), die Querstreifung ist deutlich zu sehen, ebenso viele spindelförmige Muskelkerne. Nach S
CHIEFFERDECKER
.
B
zwei einkernige, quergestreifte Muskelzellen aus dem Herzen, links vom Menschen, rechts vom Frosch. Nach D
ISSE
.
C
Querschnitt einer Insektenmuskelfaser. Es sind drei Zellkerne zu sehen und, im Sarkoplasma eingebettet, die Querschnitte von zahllosen Fibrillen. Nach R
OLLETT
.
Fig. 117.
A
zwei isolierte Primitivfibrillen
.
z
Zwischenscheibe,
i
isotrope,
q
anisotrope Substanz. Nach R
ANVIER
.
B
zwei einzelne Muskelsegmente
.
z
Zwischenscheibe,
i
isotrope Substanz,
q
anisotrope Substanz mit einer Mittelscheibe
m
. Das rechte Segment besitzt in der isotropen Substanz eine Nebenscheibe
n
.
Fig. 118.
Einzelne Muskelsegmente schematisch,
I
im gestreckten und
II
kontrahierten Zustande
.
1
In gewöhnlichem Licht,
2
in polarisiertem Licht.
a
Die anisotropen,
i
die isotropen Schichten.
Bei der Bewegung der glatten sowohl wie der quergestreiften Muskelfasern können wir dieselben beiden Phasen unterscheiden wie bei der amöboiden Bewegung: die Kontraktionsphase und die Expansionsphase. Die Kontraktion besteht in einer Verkürzung und Verdickung der Fibrillen, die von dem Punkte ihrer Entstehung aus in Form einer Kontraktionswelle über die ganze Fibrille hin verläuft. Die Teilchen verschieben sich also in der Längsrichtung derartig, daß sie sich auf einen größeren Querschnitt nebeneinander lagern. Dadurch wird die Oberfläche der Fibrille verringert, wenn sie auch nicht bis zu ihrem Minimum, bis zur Kugelform, herabsinkt, wie das bei den nackten Protoplasmamassen der Fall ist. Die gleichzeitige Kontraktion der einzelnen Fibrillen in der glatten und quergestreiften Muskelzelle bedingt selbstverständlich auch eine Verkürzung und Verdickung der ganzen Muskelfaser. Verläuft die Kontraktion sehr schnell, wie z. B. bei den Fibrillen der Infusorienzellen und den quergestreiften Muskelfasern, so schnellt die Faser blitzartig zusammen, und wir bekommen eine „Zuckung“, deren einzelne Momente man nicht mit dem Auge verfolgen kann. So zuckt z. B. der Stiel der Vorticellen plötzlich zusammen und reißt, indem er sich infolge der spiraligen Windung des Muskelfadens zu einer schraubenförmigen Gestalt zusammenzieht, das Köpfchen der Vorticelle dicht an den Fußpunkt des Stieles heran (Fig. 114 b). Die glatten Muskelfasern der Gewebe ziehen sich demgegenüber durchgehends nur äußerst träge zusammen und zeigen niemals so plötzliche Zuckungen wie die Infusorienmyoide und die quergestreiften Muskelfasern. Während aber in der glatten Muskelfibrille außer der Gestaltsveränderung keine weiteren Vorgänge mikroskopisch zu bemerken sind, zeigen die quergestreiften Muskelfibrillen entsprechend ihrem komplizierteren Bau auch höchst charakteristische Veränderungen der Querstreifung in beiden Phasen der Bewegung.
Fig. 119.
Muskelsegmente
von der Wespe mit den Röhrchen der anisotropen Substanz.
a
Anisotrope Substanz von oben gesehen,
b
von der Seite;
c
drei Muskelsegmente. Nach S
CHÄFER
.
Fassen wir ein einzelnes Muskelsegment ins Auge, so finden wir bei der Kontraktionsphase folgende Veränderungen, die zuerst ENGELMANN[229] sehr genau analysiert hat: jedes einzelne Segment wird kürzer und dicker, wie das ja aus der Verkürzung und Verdickung der ganzen Fibrille notwendig zu erwarten ist. Dabei zeigen sich auffällige Veränderungen in dem Verhältnis der isotropen zur anisotropen Substanz. Die anisotrope Substanz nimmt nämlich an Volumen zu, die isotrope dagegen ab, während das Volumen des ganzen Segments unverändert bleibt. Gleichzeitig wird die anisotrope Substanz, die vorher fester und dunkler war, weicher und heller, d. h. weniger stark lichtbrechend, während die isotrope die umgekehrten Veränderungen erfährt, d. h. fester und dunkler, also stärker lichtbrechend wird, als sie vorher war. Diese Veränderungen sind äußerst wichtig, denn sie zeigen, daß die Kontraktion auf einem Uebertritt von Substanz aus den isotropen Schichten in die anisotrope besteht, und zwar von Substanz, die dünnflüssiger ist als die der anisotropen Schicht. In neuerer Zeit hat SCHÄFER[230] die mikroskopischen Veränderungen bei diesem Vorgange mittels photographischer Aufnahmen noch eingehender studiert und dabei die interessante Tatsache gefunden, daß in der anisotropen Schicht der Faserrichtung entsprechend bis nahe zur HENSENschen Mittelscheibe parallel nebeneinander liegende, äußerst feine Röhrchen verlaufen (Fig. 119), in welche die isotrope Substanz bei der Kontraktion hineinfließt, so daß das Lumen der Röhrchen dadurch erweitert und das ganze Segment breiter und niedriger wird. Der ganze Vorgang der Kontraktion pflanzt sich nun blitzschnell von einem Muskelsegment auf das folgende und so weiter fort, so daß eine „Kontraktionswelle“ über alle Elemente der ganzen Muskelfaser verläuft.
Die Expansionsphase der glatten und quergestreiften Muskelfasern zeigt genau die Umkehr aller der Vorgänge, die wir bei der Kontraktion beobachten. Die Fibrillen strecken sich wieder, indem sie von dem Punkte aus, von dem vorher die Kontraktionswelle ihren Ausgang nahm, allmählich länger und dünner werden, so daß jetzt eine Expansionswelle von hier aus über die ganze Fibrille hin verläuft, bis sie vollständig gestreckt ist. Auch im einzelnen Segment der quergestreiften Muskelfaser haben wir genau die Umkehr der Veränderungen, die bei der Kontraktion eintraten. Das Segment wird wieder länger und dünner, die anisotrope Substanz nimmt an Volumen ab und wird dunkler, fester und stärker lichtbrechend, während die isotrope an Volumen gewinnt und heller, weicher und schwächer lichtbrechend wird, bis der Ruhezustand wieder hergestellt ist. Bei der Expansion der quergestreiften Muskelfaser tritt also aus der anisotropen Schicht dünnflüssigere Substanz wieder in die isotropen Schichten zurück.
Glatte Muskelfasern sowohl wie quergestreifte sind im Zellenstaat zu Geweben, den Muskeln, vereinigt, und zwar finden wir überall da, wo es sich darum handelt, schnelle und wiederholt starke Bewegungseffekte hervorzubringen, wie bei den Skelettmuskeln und dem Herzen, die Muskeln aus quergestreiften Fasern gebaut, während die langsamen und trägen Bewegungen der unwillkürlich sich bewegenden Organe, wie des Magens, des Darms, der Blase etc., auf der Tätigkeit glatter Muskelzellen beruhen. Die höchsten, ja geradezu erstaunliche Werte erreicht die Geschwindigkeit der Muskelkontraktion bei den Flügelmuskeln mancher Insekten, z. B. der Mücken, von denen, wie MAREY gezeigt hat, 300–400 Kontraktionen in der Sekunde ausgeführt werden können. Daß schließlich der Bewegungseffekt da, wo ungeheuer viele Muskelfasern einen Muskel zusammensetzen, ein ganz bedeutender sein wird, liegt auf der Hand. In der Tat finden wir denn auch, daß selbst in verhältnismäßig kleinen Muskeln ein enormer Energieumsatz stattfindet. So vermag ein so kleiner Muskel, wie z. B. der Wadenmuskel (Musculus gastrocnemius) des Frosches, der kaum einen Zentimeter an seiner dicksten Stelle im Querschnitt mißt, nach ROSENTHALs Beobachtungen ein Gewicht von mehr als einem Kilogramm zu heben. Ganz enorm ist die Arbeit, die der nie rastende Herzmuskel leistet. ZUNTZ[231] hat berechnet, daß das Herz eines Mannes, wenn es in normaler Weise schlägt, an einem Tage eine Arbeit von etwa 20000 Kilogrammmetern leistet, d. h. eine Arbeit, die genügend wäre, um ein Gewicht von 20000 Kilogramm einen Meter hoch zu heben. Das ist die Arbeit des Herzens an einem einzigen Tage! Wie gewaltig demnach die Arbeit des Herzens während des ganzen Lebens eines Menschen ist, bedarf keiner großen Rechnung. Der Muskel ist die vollendetste Arbeitsmaschine, die wir kennen.
** *
Die Flimmerbewegung schließlich ist nicht minder weit verbreitet als die beiden anderen Formen der Kontraktionsbewegungen. Das Infusorium, das sich im Wasser der Pfütze munter umhertummelt, bewegt sich durch Geißel- oder Wimperschlag. Die männliche Spermatozoenzelle, die sich bei der Befruchtung nach der Vereinigung mit der weiblichen Eizelle drängt, treibt sich vorwärts durch die Schwingungen ihres Geißelfadens. Die Zellen des Flimmerepithels, das unsere Luftröhre auskleidet, halten die Schleimhaut rein durch ihre Wimpertätigkeit und schieben Fremdkörper, die beim Schlucken hineingeraten sind, wieder nach außen durch den rhythmischen Schlag ihrer Flimmerhaare. Unzählig aber ist das Heer der Infusorien, weitverbreitet im Pflanzen- und Tierreich sind die geißeltragenden Spermatozoen, und kaum eine Tiergruppe gibt es, deren Körper nicht an irgendeiner Stelle ein Flimmerepithel besäße.
Fig. 120.
A
Drei Flimmerepithelzellen
aus dem Nebenhoden des Menschen. Nach S
CHIEFFERDECKER
.
B
Spermatozoen vom Menschen
.
a
Kopf,
b
,
c
Geißel. Nach S
TÖHR
.
C
Hexamitus inflatus
, ein Geißelinfusorium mit sechs Geißeln. Nach S
TEIN
.
D
Peranema
, ein Geißelinfusor,
a
schwächer,
b
stärker mit seiner Geißel schlagend.
Wie die Muskelbewegung ist auch die Flimmerbewegung eine geordnete Bewegung, d. h. die beweglichen Teilchen verschieben sich in einer ganz bestimmten Richtung. Das ist dadurch ermöglicht, daß die kontraktilen Elemente wie bei der Muskelzelle als dauernde Differenzierungen des Zellprotoplasmas entwickelt sind, und zwar hier in Form von haar- oder wimperähnlichen Anhängen des Zellkörpers. Je nachdem die Zelle ein, resp. einige wenige lange oder viele kurze „Flimmerhaare“ besitzt, spricht man von „Geißelzellen“ (Fig. 120 B, C, D) oder von „Wimperzellen“ (Fig. 120 A, Fig. 25 p. 90). Indem diese „Geißeln“ oder „Wimpern“ regelmäßig schlagende Bewegungen ausführen, entsteht die Flimmerbewegung[232].
Was die Flimmerbewegung am meisten charakterisiert, sind folgende Momente. Die Flimmerbewegung ist eine automatische Bewegung, d. h. die Impulse für die Tätigkeit der Flimmerhaare entstehen in der Flimmerzelle selbst, im Gegensatz zum quergestreiften Muskel, der die Impulse für seine Tätigkeit immer nur von außen her und zwar von seiten des Nervensystems erhält, ohne die er dauernd in Ruhe verharrt. Demgegenüber ist kein einziger Fall bekannt, in dem die Flimmerbewegung irgendwie unter dem Einfluß des Nervensystems stände und auch nur gelegentlich Impulse von seiten des Nervensystems erhielte.
Fig. 121.
Fetzen von Flimmerzellen aus dem Darm von Anodonta
. Die feinen Flimmerhaare sind nach oben gerichtet und entspringen aus dem Saum von Basalkörperchen, von dem aus die Fäden des Wurzelkegels ins Innere der Zelle ziehen. Bei
a
und
b
hängt noch ein runder Tropfen undifferenzierten Zellprotoplasmas an dem Flimmerapparat,
c
stellt einen isolierten Flimmerapparat ohne undifferenziertes Zellprotoplasma vor, und bei
d
ist ein Teil des Wurzelkegels abgetrennt. Alle Zellfetzen sind kernlos und zeigen noch Flimmerbewegung. Nach P
ETER
.
Aus vivisektorischen Versuchen scheint hervorzugehen[233], daß die physiologischen Impulse für die Bewegung der Flimmerhaare bei Flimmerepithelzellen im Protoplasma des Zellkörpers produziert werden, denn die isolierten Flimmerhaare dieser Zellen, wenn sie kein Protoplasma an ihrer Basis mehr besitzen, bleiben vollkommen bewegungslos. Hingegen vermögen einzelne Flimmerhaare solcher Zellen, wenn sie nur noch mit der geringsten Menge des basalen Protoplasmas zusammenhängen, immer noch rhythmische Schläge auszuführen. Es ist nun unlängst PETER[234] gelungen, den Ort im Protoplasma, wo die Impulse für den Schlag der Flimmerhaare bei diesen Zellen produziert werden, noch genauer zu bestimmen. Bei Anwendung von sehr starken Vergrößerungen findet man, daß die Flimmerhaare bei ihnen aus sehr kleinen körnchenartigen Gebilden entspringen, die in der oberflächlichsten Schicht des Protoplasmas gelegen sind und von APATHY als „Basalkörperchen“ bezeichnet werden. Diese Basalkörperchen müssen als die Ursprungsstätten der Impulse für die Bewegung der Flimmerhaare angesehen werden, denn PETER konnte an zerfetzten Flimmerepithelzellen des Darmkanals von Muscheln (Anodonta) (Fig. 121) feststellen, daß alle übrigen Elemente des Protoplasmas fehlen können, ohne daß die Flimmerbewegung deswegen aufhörte. So lange dagegen noch die Basalkörperchen im Zusammenhang mit den Flimmerhaaren sind, vermögen auch diese noch zu schlagen. Demgegenüber scheint es für andere Flimmerzellen, und zwar handelt es sich hier um einzellige Geißel- und Wimperinfusorien, zweifellos zu sein, daß auch die isolierte Geißel noch ganz kurze Zeit, etwa 1 Minute lang, nach der Abtrennung vom Zellkörper schlagende Bewegungen auszuführen vermag. So ist von KLEBS[235], BÜTSCHLI[236], FISCHER[237] und anderen beobachtet worden, daß die von flagellaten Infusorien spontan abgeworfene Geißel vor dem Absterben noch kurze Zeit Schlagbewegungen ausführt. Es wäre indessen verfehlt, aus diesen Tatsachen zu schließen, daß unter normalen Verhältnissen im intakten Zellkörper die autonomen Impulse ebenfalls von der Geißel produziert werden. Daß die Geißel oder das Flimmerhaar erregbar ist, wird niemand bezweifeln, da es ja aus lebendiger Substanz besteht, daß es kontraktil ist, ebensowenig, denn es führt ja Kontraktionsbewegungen fortwährend aus. Es ist also durchaus begreiflich, daß isolierte Flimmerhaare in solchen Fällen, in denen sie noch eine kurze Zeit nach der Isolierung überleben, auch noch durch Reize zu Kontraktionen veranlaßt werden können, ebenso wie das im intakten Zellkörper z. B. durch mechanische Reizung eines Flimmerhaares ebenfalls möglich ist. Mit dem Abtrennen vom Zellkörper selbst ist aber zweifellos ein mechanischer Reiz verbunden, der bei künstlicher Abtrennung so stark ist, daß die Wimper sofort durch Ueberreizung zugrunde geht, der bei dem natürlichen Abstoßungsvorgang aber sehr wohl stark genug sein kann, um einerseits noch ein kurzes Ueberleben zu gestatten, anderseits aber eine Erregung hervorzurufen, welche die Geißel zu Schlagbewegungen veranlaßt. Auf alle Fälle aber werden wir uns im intakten Zellkörper die Impulse für die autonome Wimpertätigkeit immer vom basalen Protoplasma ausgehend denken müssen. Darauf weisen auch die weiter unten zu berichtenden Tatsachen über das Zustandekommen der Metachronie des Wimperschlages hin. Wir werden daher nicht fehlgehen, wenn wir uns das Verhältnis des Flimmerhaares zum Zellkörper etwa so denken, wie das des Skelettmuskels zum Nervensystem. Auch der Skelettmuskel führt im intakten Organismus nur Zuckungen aus, wenn er Impulse vom Nervensystem her bekommt, obwohl er Erregbarkeit und Kontraktilität selbst besitzt und nach seiner Isolierung vom Organismus auch noch durch Reize der verschiedensten Art, so lange er überlebt, künstlich zu Kontraktionen veranlaßt werden kann.

Fig. 122.
Flimmerbewegung einer Wimperreihe im Profil
.
Charakteristisch für die meisten Fälle der Flimmerbewegung ist ihre Rhythmizität, denn abgesehen von einzelnen Geißel- und Wimperinfusorien schlagen die Flimmerhaare wenigstens bei lebhafterer Tätigkeit stets in regelmäßigen Intervallen. Unregelmäßig werden die Schläge nur beim Uebergang zur Ruhe oder unter dem Einfluß äußerer Faktoren.
Fig. 123.
Beroe ovata, eine Rippenqualle in natürlicher Größe
. Von den acht vom oberen (Sinnes-)Pol nach dem unteren (Mund-)Pol hin verlaufenden Rippen oder Schwimmplättchenreihen sind nur die vier Reihen der einen Seite zu sehen, und zwar zwei von vorn und zwei von der Seite.
Ein Moment schließlich, das freilich nur für Wimperzellen mit vielen Flimmerhaaren in Betracht kommt, liegt in der Metachronie der Bewegung aller einzelnen Wimpern. Es schlagen nämlich die einzelnen Wimpern einer Wimperreihe, von einem Ende beginnend, im genau gleichem Rhythmus und in genau gleicher Aufeinanderfolge, so daß jeder Schlag der ersten Wimper von einem Schlag der zweiten, dann der dritten, vierten usf. gefolgt ist. Niemals schlägt eine Wimper spontan außer der Reihe, niemals macht sie eine Bewegung, ehe nicht die vorhergehende Wimper der Reihe in Bewegung getreten ist. Dagegen beginnt sie stets sofort ihre Bewegung, nachdem die vorhergehende Wimper begonnen, und noch ehe dieselbe ihre Bewegung vollendet hat. So kommt es, daß von der letzten Wimper einer Reihe her nach der ersten hin gerechnet, jede obere Wimper jeder unteren Wimper um einen geringen Bruchteil der Bewegung voraus ist (Fig. 122). Die oberste Wimper gibt also das Zeichen für die übrigen: Ist die oberste Wimper in Ruhe, so ruhen auch die übrigen, schlägt sie, so schlagen die anderen der Reihe nach auch, und das gilt nicht bloß für die Wimpern der einzelnen Zelle, sondern im Flimmerepithel für die Wimpern aller hintereinandergereihten Zellen. Auf diese Weise entsteht ein äußerst zierliches und regelmäßiges Spiel der Wimpern, das schon manchen Beobachter gefesselt hat, und das den Eindruck macht, als ob regelmäßige Wellen über die Wimperreihen hinweglaufen, etwa so, wie wenn der Wind über ein Kornfeld streicht. Dabei schlagen, wenn mehrere parallele Reihen von Wimpern vorhanden sind, die Wimpern, die in der Querrichtung der Reihen nebeneinanderstehen, synchron, ebenso wie die parallel in einer Muskelfaser nebeneinanderliegenden Primitivfibrillen auch synchron zucken.
Um die Bewegung des einzelnen Flimmerhaares in ihren Phasen genauer kennen zu lernen, dient uns als Objekt am besten die Bewegung der Schwimmplättchen bei den Ctenophoren oder Rippenquallen[238]. Der Körper dieser wunderbaren, aus einer zarten, durchsichtigen Gallerte bestehenden Tiere besitzt acht von einem Pol nach dem andern hin verlaufende Streifen oder „Rippen“ (Fig. 123), die von einer Reihe dachziegelförmig übereinanderliegender Plättchen, den „Schwimmplättchen“, gebildet werden. Jedes Schwimmplättchen ist etwa 2 mm lang und besteht aus einer größeren Anzahl miteinander verkitteter Wimpern, die den darunterliegenden Wimperzellen der Rippen angehören. Wegen ihrer außerordentlichen Größe, ferner wegen der ungewöhnlichen Einfachheit ihrer Anordnung in einer Reihe und schließlich wegen des häufig sehr langsamen Rhythmus ihres Schlages eignen sich diese Schwimmplättchen wie kein anderes Objekt zum Experimentieren und Beobachten. Zwar sind, wie gesagt, die Plättchen aus mehreren Wimpern verkittet, aber eine jede einzelne der Wimpern macht selbstverständlich genau dieselbe Bewegung wie das ganze Plättchen, so daß wir die Beobachtungen am ganzen Plättchen direkt auf die Verhältnisse der einzelnen Wimper übertragen dürfen. Wir können bei der Größe des Objektes die Beobachtung mit bloßem Auge oder mit einer schwachen Lupe machen. Dann sehen wir, wenn wir ein einziges Schwimmplättchen im Profil betrachten, daß es in der Ruhestellung dem Körper flach angelegt ist, und zwar so, daß es zwei Krümmungen zeigt, eine stärkere von kleinerem Radius gleich über der Basis und eine schwächere von größerem Radius, aber nach der entgegengesetzten Seite in der oberen Hälfte (Fig. 124 a). Das ist die Ruhestellung. Führt das Plättchen einen Schlag aus, so gleicht sich die untere Krümmung von der Basis der Wimper an beginnend vollständig aus, ja, sie geht sogar ein klein wenig in eine entgegengesetzte Krümmung über. Das Plättchen steht daher in der extremen Schwinglage aufrecht mit einer geringen Biegung nach der entgegengesetzten Seite. Damit ist die progressive Phase des Schlages erreicht. Jetzt erfolgt die regressive Phase, in der das Plättchen wieder in seine Ruhelage zurücksinkt, dadurch, daß sich die ursprüngliche Krümmung an der Basis allmählich wieder herstellt, bis das Plättchen dem Körper wieder anliegt. Die regressive Phase erfolgt viel langsamer als die progressive. Dadurch und durch die obere Krümmung, auf deren spezielle Bedeutung wir nicht näher eingehen wollen, wird es ermöglicht, daß der motorische Effekt der progressiven Phase durch die regressive nicht wieder aufgehoben wird, sonst würde das Tier dauernd an derselben Stelle im Wasser stehen bleiben und sich nicht vom Ort bewegen.
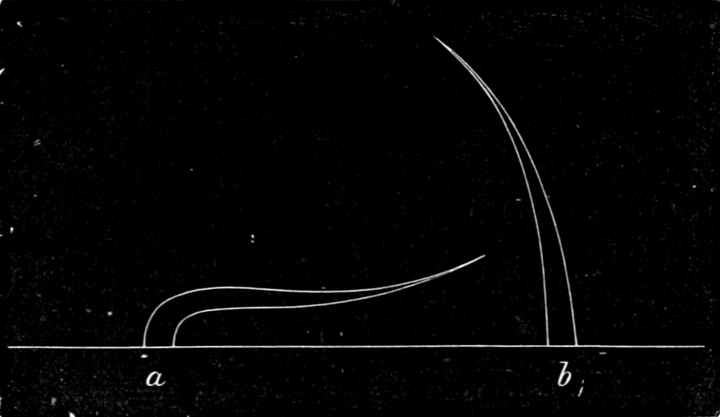
Fig. 124.
Schwimmplättchen von Beroe in Profilansicht
,
a
in Ruhelage,
b
in extremer Schwinglage.
Bei Infusorien kann man die Bewegung der einzelnen Wimper unter dem Mikroskope verfolgen, wenn man den Wimperschlag dadurch verlangsamt, daß man die Objekte in ein dickflüssiges Medium, z. B. eine Gelatinelösung, bringt. Dabei findet man, daß die Ruhestellung, von der aus die Wimper ihre Schlagbewegungen ausführt, veränderlich ist. Die Wimper liegt einmal nahe dem Körper an, das andere Mal steht sie senkrecht von ihm ab, so daß die Amplitude der Schwingung und damit die Größe des motorischen Effekts auf diese Weise sehr fein abgestuft werden kann (Fig. 125).
Aus der Formveränderung der einzelnen Wimper beim Ausführen des Schlages geht hervor, daß in der progressiven Phase des Schlages, von der Basis der Wimper ausgehend, eine Kontraktion derjenigen Seite der Wimper stattfindet, nach welcher der Schlag ausgeführt wird; denn eine einfache Ueberlegung zeigt, daß sich diese Seite beim Schlage verkürzen muß, wenn sie in die extreme Schwinglage übergeht. Gleichzeitig wird dadurch die gegenüberliegende Seite passiv mit hinübergezogen, wobei sie nach einfachen mechanischen Prinzipien gedehnt werden muß. In der regressiven Phase des Schlages erschlafft die kontrahierte Seite wieder, und in dem Maße, wie sie erschlafft, biegt sich die Wimper infolge der Elastizität der gedehnten Seite wieder in die Ruhelage zurück. Die progressive Phase ist also die Kontraktionsphase, die regressive die Expansionsphase des einzelnen Wimperschlages. Durch rhythmischen Wechsel zwischen beiden kommt das Spiel der Wimperbewegung zustande.
Fig. 125.
Bewegung einer einzelnen Wimper eines ciliaten Infusoriums
(
Urostyla grandis
, Randwimper)
von zwei verschiedenen Ruhestellungen aus
,
I
u.
II
.
A
Progressive,
B
regressive Phase der Bewegung in mehrere aufeinanderfolgende Momente zerlegt. Die Pfeilspitze gibt die Richtung an, nach welcher der Infusorienkörper durch den Schlag vorwärts getrieben wird.
Nicht alle Formen der Flimmerhaare schlagen aber wie die Haare der Ctenophoren-Schwimmplättchen in einer Ebene. Manche Wimpern, besonders gewisse Geißelfäden, beschreiben kompliziertere, trichterförmige, schraubenförmige, peitschenförmige Bahnen, und die älteren Physiologen haben danach mehrere Formen der Flimmerbewegung unterschieden. Allein, wie auch immer die Schwingbahn der verschiedenen Flimmerhaare beschaffen sein mag, allen liegt dasselbe Prinzip zugrunde, daß eine kontraktile Seite sich vom Zellkörper aus kontrahiert und dabei die gegenüberliegende Seite dehnt, welche letztere in der Expansionsphase die Wimper durch ihre Elastizität wieder in die Ruhelage zurückführt. Je nach der gegenseitigen Lagerung der kontraktilen zu der passiv gedehnten Substanz resultiert daraus eine Schlagbewegung in einer Ebene oder in komplizierterer Form.
Die Arbeitsleistung der Flimmerbewegung steht in ihren Werten weit hinter derjenigen der Muskelbewegung zurück. ENGELMANN, BOWDITCH u. a. haben die Arbeitsleistung von Flimmerepithelien berechnet, und in neuerer Zeit hat JENSEN[239] sogar die Arbeit einer einzigen Infusorienflimmerzelle, und zwar des für die verschiedensten Untersuchungen so sehr geeigneten Paramaeciums, gemessen. Dabei hat sich herausgestellt, daß ein Paramaecium, das eine Länge von etwa 0,25 mm besitzt, ein Gewicht von 0,00158 mg eben noch zu heben imstande ist, d. h. etwa das Neunfache seines eigenen Körpergewichts.
** *
Man hat bisweilen die Ansicht ausgesprochen, die amöboide Bewegung hätte nichts mit der Muskelbewegung, und diese nichts mit der Flimmerbewegung gemein, alle drei seien ganz verschiedene Bewegungsformen. Unser kurzer Ueberblick wird uns demgegenüber schon zur Genüge davon überzeugt haben, daß diese drei Formen der Kontraktionsbewegung allen anderen Bewegungsmodi gegenüber eine einheitliche Gruppe bilden. Es ist wahr, daß sie gewisse Verschiedenheiten untereinander zeigen, daß sie sogar beim ersten Anblick recht verschieden voneinander erscheinen; aber wir haben gesehen, daß sie doch alle auf dem gleichen Prinzip beruhen, auf dem Prinzip der abwechselnden Oberflächenverringerung (Kontraktion) und Oberflächenvergrößerung (Expansion) durch Umlagerung von Teilchen der lebendigen Substanz selbst. Daß diese Verschiebung der Teilchen bei der amöboiden Bewegung eine ganz regellose, bei der Muskel- und Flimmerbewegung eine streng geordnete ist, beweist nur, daß die beiden letzteren eine höhere Stufe der Differenzierung repräsentieren als die erstere. Daß sie aber im engsten genetischen Zusammenhang mit der amöboiden Bewegung stehen, daß sie phylogenetisch sich aus ihr entwickelt haben, beweisen zahlreiche Fälle von Uebergängen zwischen amöboider und Muskelbewegung einerseits und amöboider und Wimperbewegung anderseits. Einerseits hat ENGELMANN[240] Rhizopoden gefunden (Acanthocystis) mit fadenförmigen, geraden, unverzweigten Pseudopodien, die sich blitzschnell in ihrer Längsrichtung zu kontrahieren vermögen, von denen eine glatte Muskelfaser nur durch ihre dauernde Differenzierung unterschieden ist, so daß ENGELMANN diese Pseudopodien zweckmäßig als „Myopodien“ bezeichnet hat: anderseits hat man mehrfach Fälle beobachtet, in denen fadenförmige Pseudopodien amöboider Zellen pendelartige Schwingungen ausführten, anfangs unregelmäßig und langsam, später rhythmisch, bis sie sich zu wirklichen, dauernden Wimpern entwickelt hatten. Wenn nicht schon eine sorgfältige Beobachtung der einzelnen Momente bei den verschiedenen Kontraktionsbewegungen allein die Identität des ihnen zugrunde liegenden Prinzips und ihre Zusammengehörigkeit allen anderen Bewegungsmodi gegenüber deutlich genug bewiese, so bedürfte es nach diesen letzteren Tatsachen keines weiteren Beweises mehr, um ihren genetischen Zusammenhang außer Zweifel zu setzen.
Die Kontraktionsbewegungen der lebendigen Substanz folgen überall dem gleichen Prinzip. Mag die lebendige Substanz als Amöbe auf den faulenden Blättern einer Wasserpfütze umherkriechen, mag sie sich als weißes Blutkörperchen durch die Saftlücken in den Geweben des tierischen Körpers zwängen, mag sie als Protoplasmanetz in der Zellulosekapsel einer Pflanzenzelle zirkulieren, mag sie als Muskelfaser die Kontraktionen des unermüdlichen Menschenherzens vollführen, mag sie schließlich als Flimmerhaar im Eileiter des Weibes die unbefruchtete Eizelle in den Uterus hinabführen, um sie der Befruchtung preiszugeben, überall haben wir denselben Vorgang der abwechselnden Kontraktion und Expansion der lebendigen Substanz durch gegenseitige Umlagerung ihrer Teilchen.
2. Die Produktionvon Licht.
In den Bewegungen der lebendigen Substanz, vor allem in den Kontraktionsbewegungen, tritt am deutlichsten der Umsatz der in den Körper als Nahrung eingeführten potentiellen Energie in lebendige Energie hervor. Viel weniger in die Augen springend zeigt sich dieselbe Tatsache in der Produktion anderer Formen lebendiger Energie, in der Produktion von Licht, Wärme und Elektrizität, zu deren Nachweis es sogar teilweise sehr komplizierter Methoden und empfindlicher Instrumente bedarf.
Die Produktion von Licht ist nächst der Produktion mechanischer Bewegungsenergie noch am sinnfälligsten und hat von jeher einen geheimnisvollen Zauber auf den Beobachter ausgeübt. Es hat in der Tat einen märchenhaften Reiz, wenn man an einem warmen Abend auf ruhigem Meere bei jedem Ruderschlag das Wasser aufleuchten sieht in hellem, gelblichem Glanze, oder wenn man in einer lauen Frühlingsnacht die Landschaft des Südens erfüllt sieht von tausendfachen Funken, die lautlos aufblitzen und verschwinden und magische Kreise durch die milde Nachtluft ziehen.
Das Leuchten der lebendigen Substanz ist im ganzen Organismenreiche weit verbreitet. Vor allem ist es eine bedeutsame Tatsache, daß gerade die wunderbaren pelagischen Tiere, deren zarte, glashell durchsichtige Körper die oberen Schichten der Meere erfüllen und als „Plankton“ umhertreiben, fast sämtlich die Fähigkeit des Leuchtens besitzen. Es legt diese Tatsache die Vermutung nahe, daß die Leuchtfähigkeit der lebendigen Substanz möglicherweise viel weiter verbreitet ist, als wir es wissen, daß wir das Licht nur nicht sehen, weil die Organismen nicht durchsichtig sind, oder weil die Lichtproduktion zu schwach ist, als daß sie durch dickere Körperschichten hindurch gesehen werden könnte; ja, es ist nicht unmöglich, daß in unserem eigenen Körper gewisse Zellen Licht produzieren. In den meisten Fällen freilich, wie bei den leuchtenden Insekten, dürfte das Leuchtvermögen eine durch Selektion besonders ausgebildete Eigentümlichkeit sein, die ihre eigene Bedeutung für das Leben der betreffenden Tiere hat. Auch bei den pelagischen Seetieren ist eine solche Bedeutung jedenfalls vorhanden, besonders da sie meistens nur auf Reizung plötzlich aufleuchten, so daß man vermuten kann, daß das Leuchten als Schreckmittel gegen Feinde dienen mag.