ZWEITER TEIL Spezielle Botanik. (continued 4)
Reading edition
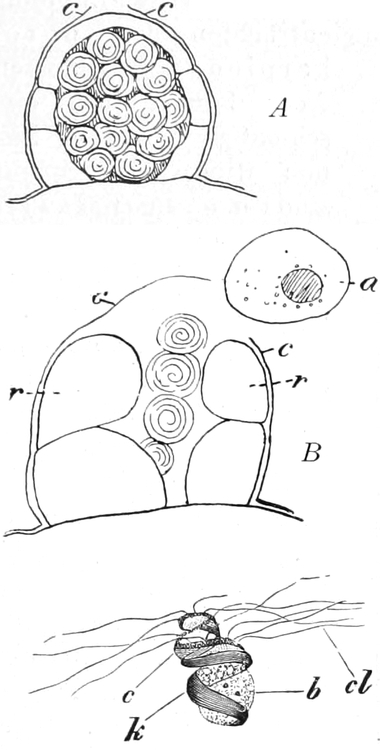
Fig. 477. A Reifes Antheridium von Woodsia ilvensis. Die Kutikula c ist geplatzt. B Geöffnetes Antheridium, d Deckelzelle, r aufgequollene Ringzelle. Nach SCHLUMBERGER. — C Spermium von Struthiopteris germanica. k Zellkern, cl Geißeln, b Blase aus einer Vakuole hervorgegangen, c Plasma. Vergr. 850. Nach SHAW.
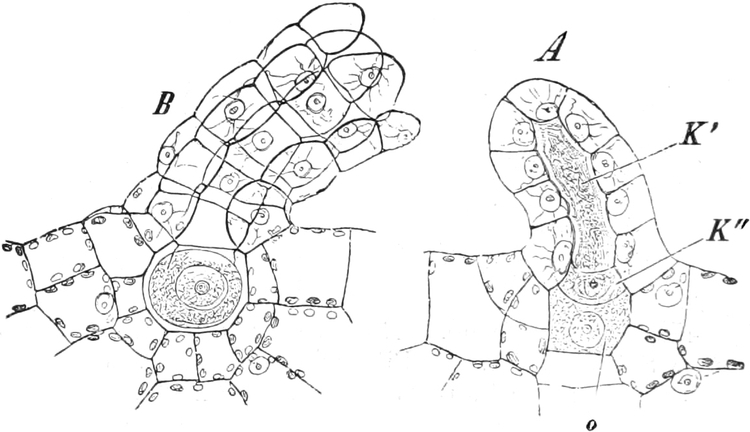
Fig. 478. Polypodium vulgare. A Junges Archegonium. K′ Halskanalzelle, K″ Bauchkanalzelle, o Ei. B Geöffnetes Archegonium. Vergr. 240. Nach STRASBURGER.
Die Archegonien (Fig. 478) entstehen in dem mehrschichtigen mittleren Teile älterer Prothallien durch Teilung einzelner Zellen. Ihr Halsteil ist länger als bei den Eusporangiaten, besteht aus vier Zellreihen und schließt eine zentrale langgestreckte Halskanalzelle ein. Im Bauchteile befindet sich die große Eizelle, über ihr die Bauchkanalzelle. Die Kanalzellen werden aufgelöst und erfüllen den Kanal mit einer stark lichtbrechenden Substanz, die bei Wasserzutritt stark aufquillt; das Archegonium öffnet sich an seiner Spitze. Die Embryoentwicklung ist aus Fig. 464 zu ersehen.
Ausnahmsweise kann bei gewissen Farnkräutern der Sporophyt auf dem Prothallium durch vegetative Knospung sich entwickeln, ohne daß Sexualorgane mitwirken oder ausgebildet werden (Apogamie), und umgekehrt kommt es auch vor, daß an den Farnwedeln keine Sporen, sondern direkt Prothallien erzeugt werden (Aposporie).
Giftig: Pteridium aquilinum, der Adlerfarn, enthält einen Giftstoff, der bei Pferden Erkrankungen und selbst den Tod herbeiführt.
Offizinell ist Dryopteris (Aspidium) filix mas, Rhizoma Filicis (Pharm. germ., austr., helv.), ferner das südeuropäische Adiantum Capillus Veneris, Frauenhaar, dessen Blätter benutzt werden: Folium Adianti seu Herba Capilli Veneris (Pharm. helv.). Auch das nordamerikanische Adiantum pedatum liefert Folium Adianti (Pharm. helv.). Die seidenähnlichen, glänzendbraunen Gliederhaare am Grunde der Blattstiele verschiedener Baumfarne, besonders von Cibotium Baranetz, im tropischen Asien und auf den pazifischen Inseln, liefern die als Wundwatte und auch als Polstermaterial benutzten Paleae haemostaticae (Pennawar Djambi auf Sumatra, Pakoe-Kidang auf Java, Pulu in Amerika) (Pharm. austr.).
Zu den Wasserfarnen gehören nur wenige Gattungen wasser- oder sumpfbewohnender Kräuter. Sie sind sämtlich heterospor. Die Makro- und Mikrosporangien werden in besonderen, an der Basis der Blätter sitzenden Behältern, sog. Sporangienfrüchten oder Sporokarpien, eingeschlossen. Auch besitzt ihre einschichtige Wandung keinen Ring. Die Sporen sind von eigenartigen Perisporien umgeben.
Die Wasserfarne umfassen die beiden Familien der Marsiliaceen (mit drei Gattungen) und der Salviniaceen (mit zwei Gattungen). Zu ersterer gehört die Gattung Marsilia, die bei uns durch M. quadrifolia vertreten ist (Fig. 479 A). Sie hat eine kriechende, verzweigte Achse mit einzeln stehenden, langgestielten Blättern, deren Spreite aus zwei nahe beieinander stehenden Fiederblattpaaren sich zusammensetzt. Über der Basis des Blattstiels entspringen paarweise, bei anderen Arten in noch größerer Anzahl, die gestielten ovalen Sporokarpien, von denen ein jedes seiner Anlage nach dem assimilierenden sterilen, hier aber ungegliedert bleibenden Blatteil entspricht. Die jungen Blätter sind, wie bei den Farnen, an der Spitze schneckenförmig eingerollt.
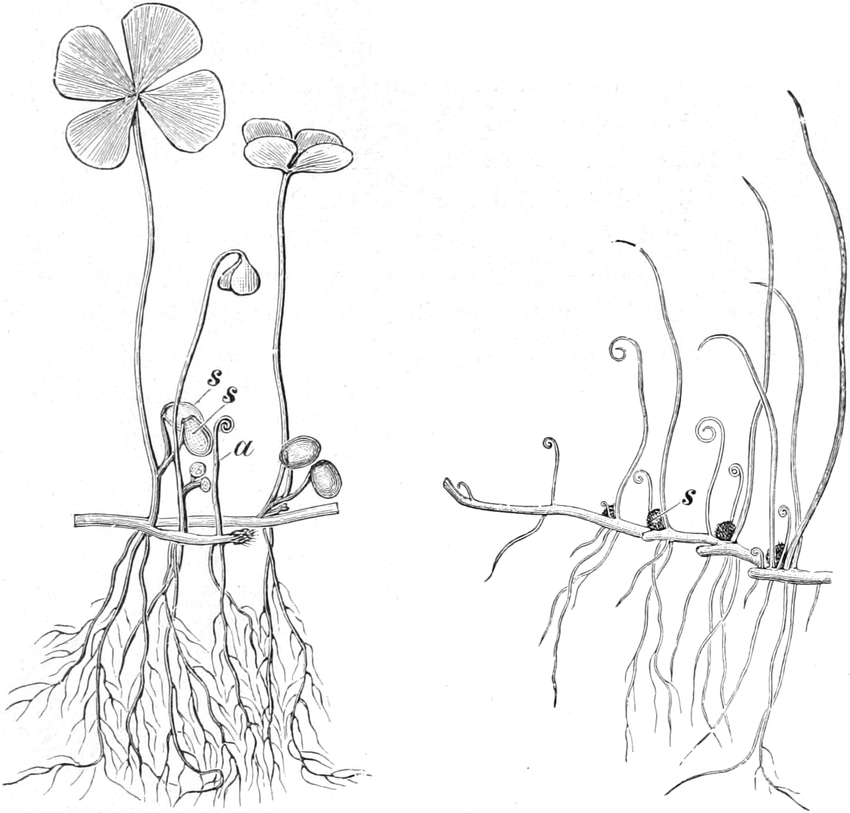
Fig. 479. Wasserfarne. A Marsilia quadrifolia. a Junges Blatt, s Sporokarpien. B Pilularia globulifera. s Sporokarpien. Verkleinert. Nach BISCHOFF.
Die Gattung Pilularia, zu der als einheimische Art P. globulifera, ebenfalls auf sumpfigen Wiesen wachsend, gehört, unterscheidet sich von Marsilia durch einfache lineale Blätter, an deren Grunde die kugeligen, in der Anlage dem sterilen Blattstiel entsprechenden Sporokarpien einzeln entspringen (Fig. 479).
Die zweite Familie, Salviniaceen, enthält frei schwimmende Wasserpflanzen. Die erste Gattung Salvinia ist in unserer Flora durch S. natans vertreten, deren wenig verzweigter Stengel an jedem Knoten drei Blätter trägt; die beiden oberen sind als ovale Schwimmblätter ausgebildet, das untere dagegen ist in zahlreiche, in das Wasser herabhängende, fadenförmige, behaarte Zipfel geteilt und übernimmt die Funktion der fehlenden Wurzeln. An diesen Wasserblättern sitzen am Grunde der basalen Zipfel zu mehreren die kugeligen Sporokarpien (Fig. 480 A), die bei den Salviniaceen eine andere Entwicklungsgeschichte zeigen als bei den Marsiliaceen. Die Sporangien entspringen auf einem säulenförmigen Receptaculum, das seiner Anlage nach einem modifizierten Wasserblattzipfel entspricht. Die Hülle dagegen ist als Indusium aufzufassen; sie entsteht als Neubildung in Form eines Ringwalles, der krugförmig und schließlich hohlkugelförmig über das Receptaculum und seinen Sporangiensorus emporwächst, am Scheitel aber dicht zusammenschließt. Die zweite Gattung Azolla ist vorwiegend tropisch und stellt zierliche, reichverzweigte Schwimmpflänzchen vor mit dicht aufeinanderfolgenden Blättchen in zweizeiliger Anordnung. Jedes Blatt hat zwei Lappen, von denen der obere schwimmt und assimiliert, der untere ins Wasser taucht und an der Wasseraufnahme sich beteiligt. Der obere Lappen enthält eine Höhlung, die mit enger Öffnung nach außen mündet und stets Fäden der blaugrünen Alge Anabaena Azollae beherbergt. Zwischen diesen wachsen aus der Wand der Höhlung Haare hinein, eine Erscheinung, die auf das Bestehen eines symbiotischen Verhältnisses zwischen Azolla und Anabaena hindeutet. Azolla besitzt zarte lange Würzelchen an der Unterseite des Stengels und Sporenfrüchte, die meist zu zweien am Unterlappen des Blattes einzelner Seitenzweige entspringen.
Der Bau der Sporangien und Sporen und die Entwicklung der Prothallien zeigen manche Unterschiede den Filices gegenüber. Sie mögen zunächst für die Salviniaceen an dem Beispiel von Salvinia natans[435] erläutert werden. Die Sporokarpien enthalten entweder Mikrosporangien in größerer Zahl oder Makrosporangien in geringerer Zahl (Fig. 481 A, ma, mi). Beiderlei Sporangien erinnern in ihrem Aufbau und ihrer Entwicklung an die Sporangien der leptosporangiaten Farnkräuter; sie sind gestielt, besitzen im reifen Zustande eine einschichtige dünne Wandung, aber keinen Ring (B, D). Die Mikrosporangien umschließen 64 Mikrosporen, die in einer schaumigen, erhärteten Zwischensubstanz eingebettet liegen, und zwar, ihrer Entstehung in Tetraden aus den Sporenmutterzellen entsprechend, zu je vier genähert (C). Die schaumige Zwischensubstanz geht aus dem Plasma der in einschichtiger Lage gebildeten Tapetenzellen hervor.
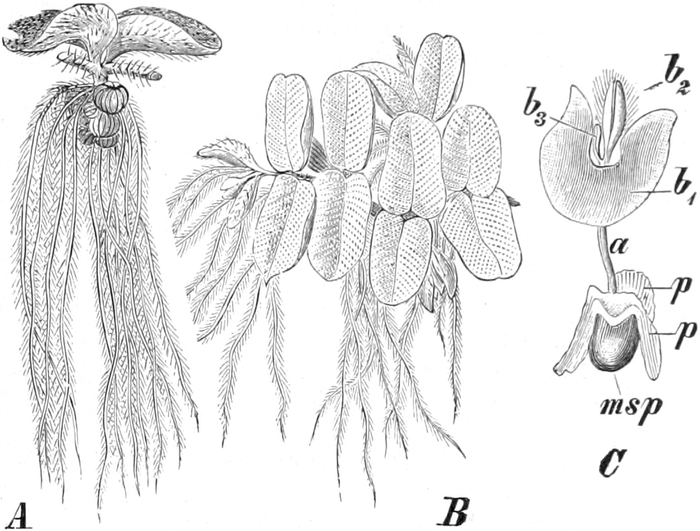
Fig. 480. Salvinia natans. A von der Seite. B Von oben. Verkleinert. Nach BISCHOFF. C Keimpflanze, msp Makrospore, p Prothallium, a Stengel, b1 b2 b3 die drei ersten Blätter. b1 das sog. Schildchen. Vergr. 15. Nach N. PRINGSHEIM.
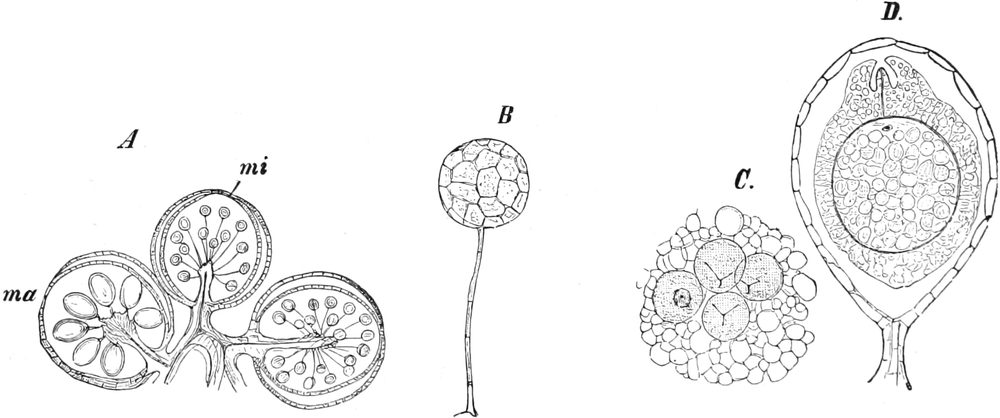
Fig. 481. Salvinia natans. A, ma Makrosporokarp, mi Mikrosporokarp im Längsschnitt. Vergr. 8. B Ein Mikrosporangium von außen. Vergr. 55. C In schaumige Zwischensubstanz eingebettete Mikrosporen. Vergr. 250. D Makrosporangium und Makrospore, im Längsschnitt. Vergr. 55. Nach STRASBURGER.
Die Mikrosporangien platzen nicht auf; die Mikrosporen entwickeln nur je ein kurzes schlauchförmiges männliches Prothallium, das nach außen durch die Sporangienwand hervortritt, nur aus wenigen Zellen sich aufbaut und nur zwei Antheridien enthält (Fig. 482). Jedes Antheridium erzeugt im ganzen vier Spermien, die durch Aufbrechen der Zellwände nach außen gelangen. Obwohl somit dieses Prothallium sehr vereinfacht erscheint, läßt es sich unschwer auf die Prothallien der Filices zurückführen.
Die Makrosporangien sind größer als die Mikrosporangien und besitzen ebenfalls eine einschichtige Wandung (Fig. 481 D), enthalten aber nur eine einzige große Makrospore, da nur eine der 32 angelegten Sporen auf Kosten der übrigen sich weiter entwickelt. Die Makrospore ist mit eckigen Proteïnkörnern, mit Öltröpfchen und Stärkekörnern dicht erfüllt; an ihrem Scheitel liegt dichteres Plasma und der Kern. Ihre braune Sporenwand (Exospor) ist von einer dicken schaumigen Hülle, dem Perispor, überlagert, die der Zwischensubstanz des Mikrosporangiums entspricht und wie diese aus dem Tapetenzellplasma hervorgeht. Die Makrospore bleibt von der Sporangiumwand umschlossen, wird mit dieser von der Mutterpflanze frei und schwimmt an der Wasseroberfläche. Bei ihrer Keimung teilt sie sich in eine scheitelständige kleinere Zelle, aus der ein kleinzelliges weibliches Prothallium hervorgeht, und in eine darunter liegende große Zelle, die mit ihrem Reichtum an Reservestoffen zu dessen Ernährung dient und sich nicht weiter teilt, obwohl ihr Kern durch freie Kernteilung zahlreiche, wandständige Tochterkerne liefert. Die Sporenhaut platzt in drei Klappen auf, ebenso springt die Sporangienwand auf, und das grüne Prothallium ragt nun als kleines sattelförmiges Gebilde etwas hervor. Es entwickelt drei bis fünf Archegonien; aber nur die befruchtete Eizelle eines von ihnen kommt zur Weiterentwicklung und zur Bildung eines Embryo, der mit seinem Fuß im erweiterten und schließlich gesprengten Archegoniumbauch steckt (Fig. 483). Das erste Blatt der Keimpflanze (Fig. 480 C) hat schildförmige Gestalt, es schwimmt auf der Oberfläche des Wassers.
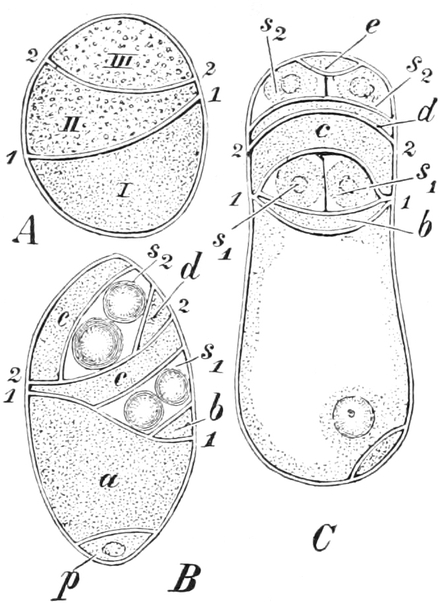
Fig. 482. Salvinia natans. Männliche Prothallien. A Teilung der Mikrosporen in die drei Zellen I–III. Vergr. 860. B Fertiges Prothallium von der Flanke. C Von der Bauchseite. Vergr. 640. Zelle I hat sich in die Prothalliumzellen a und p geteilt, p ist als Rhizoïdzelle zu deuten; Zelle II in die sterilen Zellen c, b und die beiden spermatogenen Zellen s1, von denen jede zwei Spermien bildet; Zelle III in die sterilen e, d und die beiden spermatogenen Zellen s2. Die Zellen s1 s1 und s2 s2 stellen zwei Antheridien vor, die Zellen b, c, d, e deren Wandungszellen. Nach BELAJEFF.
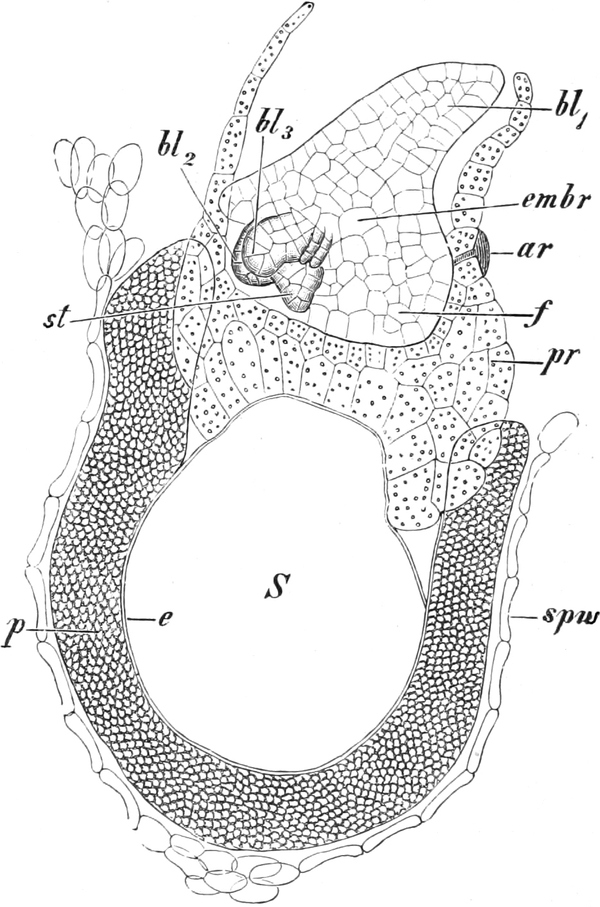
Fig. 483. Salvinia natans. Embryo im Längsschnitt, Prothallium pr, s Sporenzelle, e Exospor, p Perispor, spw Sporangiumwand, embr Embryo, f Fuß, bl, bl2 bl3 die drei ersten Blätter, st Stammscheitel. Vergr. 100. Nach PRINGSHEIM.
Bei Azolla[436] verläuft der Entwicklungsgang in ähnlicher Weise, aber die Sporangien und Sporen zeigen einige Besonderheiten. Die Mikro- und Makrosporocarpien entwickeln sich anfangs in gleicher Weise; ein jedes legt ein einziges Makrosporangium an, das von der Hülle umwallt wird, und aus dessen Stiel dann innerhalb der Hülle die Mikrosporangien hervorsprossen. Im Mikrosporokarp schrumpft die Anlage des Makrosporangiums, und nur die Mikrosporangien entwickeln sich weiter; im Makrosporokarp gelangt dagegen nur das Makrosporangium zur Ausbildung. In den Mikrosporangien werden die 64 Sporen durch eine schaumige Zwischensubstanz, die von dem Periplasmodium geliefert wird, zu 5–8 rundlichen Ballen, den Massulae, vereinigt. Jede Massula ist an der Oberfläche mit gestielten Widerhäkchen, Glochiden, Auswüchsen der Zwischensubstanz besetzt. Die Sporangiumwand platzt auf und entläßt die Massulae, die im Wasser zu den Makrosporen gelangen. In den Makrosporangien werden 32 Makrosporen angelegt, aber nur eine Spore wächst weiter, verdrängt alle anderen und preßt schließlich auch die Wandung des Makrosporangiums zusammen, so daß diese dicht an die eiförmige Sporenfruchtwandung zu liegen kommt. Das Perispor umgibt die Makrospore als schaumige, mit Vertiefungen und fadenförmigen Verlängerungen versehene Haut und bildet an ihrem Scheitel einen Aufsatz von drei birnförmig gestalteten Gebilden, den Schwimmkörper. Die Massulae haken sich in das Perispor fest. Die Sporenfrucht reißt am unteren Teile auf, ihr Scheitel verbleibt an der freigewordenen Makrospore in Form eines Schirmes. Die Prothalliumbildung stimmt im wesentlichen mit Salvinia überein, an den wenigzelligen männlichen Prothallien, die aus den Massulae hervorwachsen, entsteht aber nur je ein einziges Antheridium mit acht Spermien.
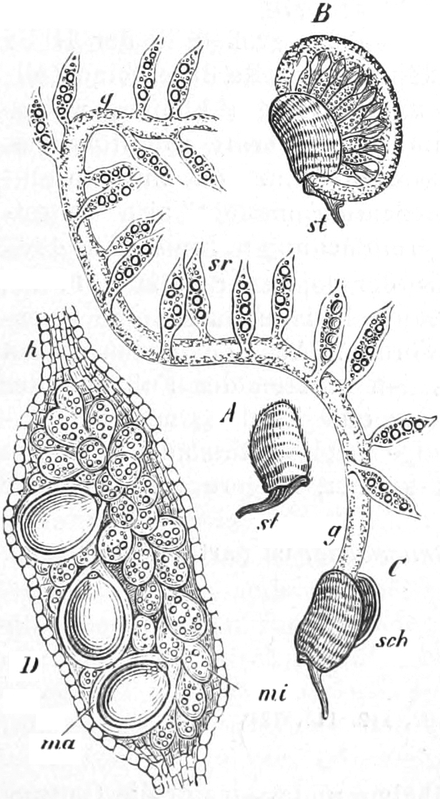
Fig. 484. Marsilia salvatrix. A Sporokarp in nat. Gr., st Stiel. B In Wasser aufgesprungenes Sporokarp mit dem hervortretenden Gallertring. C Dieser (g) zerrissen und gestreckt mit den Sorusfächern sr, Sporokarpschale sch. D Unreifer Sorus. m Makrosporangien, mi Mikrosporangien. Nach J. SACHS und J. HANSTEIN.
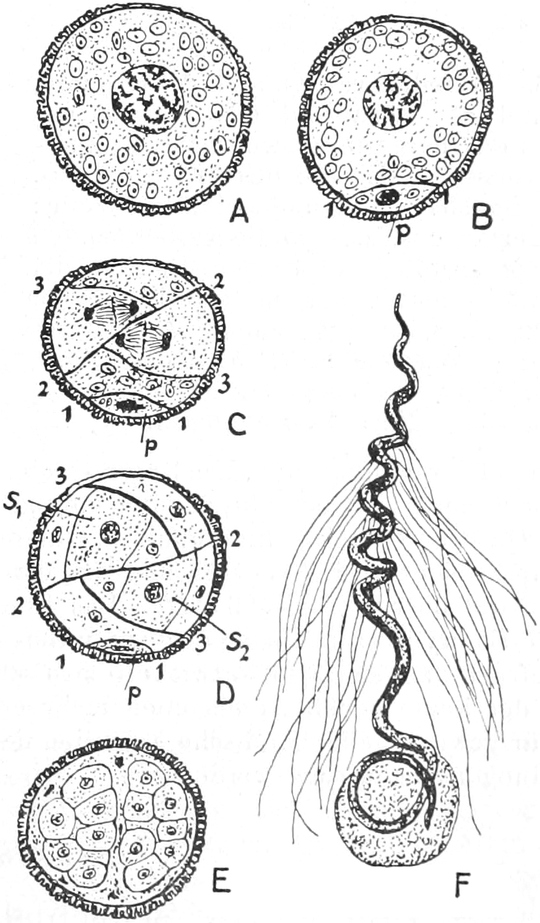
Fig. 485. Marsilia quadrifolia. Entwicklung des männlichen Prothalliums aus der Spore A. In B durch Wand 1 eine kleine Prothalliumzelle (rudimentäre Rhizoïdzelle) p abgeteilt, C und D weitere Teilungen. s1 und s2 die Mutterzellen der spermatogenen Zellen in beiden Antheridien. E Reifes Stadium, die beiden Gruppen von je 16 Spermienzellen, aus s1 und s2 hervorgegangen, liegen in dem durch Auflösung der peripheren sterilen Zellen gebildeten Plasma. F Ein Spermium stark vergrößert, die Zilien entspringen einem bandförmigen, dem schraubig gewundenen Kerne anliegenden Blepharoplasten. Nach LESTER W. SHARP.
Die Sporokarpien der Marsiliaceen[437] sind komplizierter gebaut, enthalten bei Pilularia globulifera vier Fächer, jedes mit einem Sorus, bei Marsilia zahlreiche Fächer (14–18) mit je einem Sorus, in zwei Reihen nebeneinander gelagert. Die Sori beider Gattungen führen zugleich Makro- und Mikrosporangien. Sie entstehen wie bei manchen Farnen am Blattrande der Sporophyllanlage aus Oberflächenzellen, die dann nachträglich vom umgebenden Gewebe überwallt werden. So liegen sie schließlich eingebettet im Sporophyllgewebe, dessen äußere Wandschichten zu einer harten Schale sich differenzieren. Nach einer Ruhezeit keimen die Sporokarpien in Wasser. Bei Pilularia quillt das die Sori umgebende Gewebe stark auf, sprengt die Schale am Scheitel vierklappig auf und tritt als Schleimmasse mit den Sporangien hervor, aus denen ebenfalls durch Verquellung der Wandungen die Sporen frei werden. Prothalliumentwicklung und Befruchtung erfolgen in dieser mehrere Tage lang sich haltenden Schleimmasse. Die Sporokarpschale von Marsilia dagegen wird zweiklappig aufgesprengt. Eine den Sorusfächern an Rücken- und Bauchnaht des Sporokarps ringförmig anliegende knorpelige Gewebemasse quillt stark gallertig auf, sprengt die Bauchnaht, tritt hier hervor, zieht die Sori, die von häutigen Hüllen umgeben sind, mit heraus, verlängert sich wurmförmig und reißt schließlich durch (Fig. 484).
Aus der Mikrospore geht innerhalb der Sporenhülle ein reduziertes männliches Prothallium hervor, das im fertigen Zustand nur zwei Antheridien mit je 16 Spermienzellen umschließt und nach dem Aufplatzen der Hülle die korkzieherartig gewundenen, mit zahlreichen Zilien versehenen Samenfäden entläßt (Fig. 485).
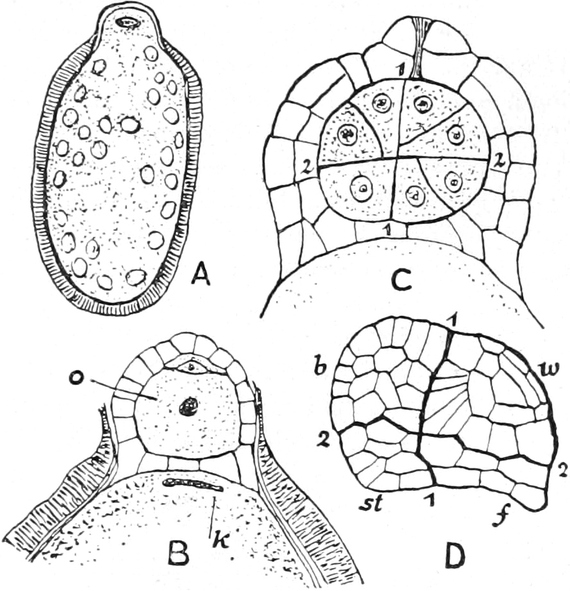
Fig. 486. Marsilia vestita. A Makrospore, am Scheitel der Kern und das Plasma, aus dem das in B dargestellte weibliche Prothallium hervorgeht; o Eizelle des Archegoniums, darüber Bauchkanal- und Halskanalzelle; k Kern der in der Sporenhülle verbleibenden großen Sporenzelle. C Junger Embryo im Archegonium nach den ersten Teilungen, 1 Basalwand, 2 Quadrantenwand. D Späteres Stadium, w Wurzelanlage, b erstes Blatt, st Stamm, f Fuß. A Vergr. 60, B 360, C 525, D 260. Nach D. CAMPBELL.
Die dickwandige Makrospore entwickelt in ähnlicher Weise wie bei Salvinia an ihrem aufspringenden Scheitel aus dem hier befindlichen dichteren Plasma, das von der großen, in der Hülle verbleibenden Sporenzelle durch eine Zellwand abgeteilt wird, ein kleines, wenigzelliges, im Längsschnitt sattelförmiges, ergrünendes Prothallium, das nur ein einziges Archegonium erzeugt, also weitestgehende Vereinfachung aufweist (Fig. 486).
Die Entwicklung des Embryos folgt dem Typus der leptosporangiaten Farne, indem die Eizelle sich erst durch eine längsgerichtete Basalwand, dann durch eine Querwand in Quadranten teilt, die darauf in Oktanten zerlegt werden. Aus den beiden oberen Oktantenpaaren geht die Wurzel und das erste Blatt, aus den unteren der Fuß und der Stammscheitel hervor (Fig. 486 C D). Das Prothallium wächst eine Zeitlang mit und umhüllt den Embryo; es treibt aus seinen unteren Zellen einige farblose Rhizoïden. Findet keine Befruchtung statt, so entwickelt sich aus ihm ein kleiner, längere Zeit lebender Thallus, der keine neuen Archegonien mehr erzeugt.
Für gewisse neuholländische Marsilien der Gruppe Drummondi ist parthenogenetische Keimbildung nachgewiesen worden[438].
1. Ordnung. Equisetaceae. Die Schachtelhalme umfassen nur die Gattung Equisetum, die in vergangenen Erdperioden bis in die Trias zurückreicht und heute nur noch in 20 weit verbreiteten Arten vertreten ist. Diese sind teils Land-, teils Sumpfpflanzen. Sie zeigen einen sehr charakteristischen Aufbau ihrer ungeschlechtlichen Generation. Aus einem im Boden kriechenden Rhizom entspringen aufrechte Halme von meist nur einjähriger Lebensdauer. Bei Equisetum arvense (Fig. 488), dem Ackerschachtelhalm, sowie auch bei anderen Arten werden seitliche kurze Rhizomäste in Form von rundlichen Knollen als Reservestoffbehälter und Überwinterungsorgane ausgebildet. Die oberirdischen Halme bleiben entweder einfach, oder sie verzweigen sich in quirlig gestellte Äste zweiter, dritter usw. Ordnung. Alle Achsen sind aus gestreckten Internodien zusammengesetzt, innen von einem zentralen und von peripherischen Luftgängen sowie von einem Kreis von kollateralen Leitbündeln durchzogen (Fig. 487).
An den Knoten sitzen abwechselnde Quirle von zugespitzten, unterwärts in eine den Stengel umschließende Scheide verwachsenen Schuppenblättern. Die Internodien sind mit ihrer Basis in diese Scheiden eingeschachtelt. Die Seitenzweige werden in den Blattachseln angelegt und brechen quer durch die Scheiden nach außen hervor. Entsprechend der geringen Größe und ungeeigneten Beschaffenheit der Blattspreiten übernehmen die Halme die Funktion der Assimilation und bilden das chlorophyllführende Gewebe aus.
Die Sporangien werden von besonders gestalteten Blättern, Sporophyllen, erzeugt. Diese sind in mehreren Quirlen an den Enden der Sprosse angeordnet und bilden somit zapfenförmige Sporophyllstände (Fig. 488), die in ihrem Aufbau den männlichen Blüten der Koniferen gleichen und auch als Blüten zu bezeichnen sind. Der unterste Quirl ist steril, bildet einen kurzen Kragen. Die Sporophylle selbst haben die Form eines gestielten Schildes, an dessen Unterseite 5–10 sackförmige, mit Längsriß aufspringende Sporangien sitzen (Fig. 488 B, C). Das sporenbildende Gewebe ist im jüngeren Sporangium von einer mehrschichtigen Wandung umgeben. Während die inneren Lagen als Tapetenzellen ihre Wandung auflösen und ihr Plasma zum Periplasmodium wird, das zwischen die sich abrundenden Sporen eindringt und bei der Bildung der Sporenwand aufgebraucht wird, bleibt bei der Reife nur die äußerste Zellschicht als definitive Wandung erhalten; ihre Zellen erhalten Spiral- und Ringfaserverdickungen; die Sporangien gleichen darin den ihnen homologen Pollensäcken der Phanerogamen. Das Aufspringen geschieht durch Kohäsionszug des schwindenden Füllwassers und durch die Kontraktion der dünnen Membranteile beim Austrocknen. Das geöffnete Sporangium entleert zahlreiche grüne Sporen mit eigenartig gebauter Wand. Der aus Endospor und Exospor zusammengesetzten eigentlichen Sporenwand wird von dem Periplasmodium ein Perispor aufgelagert. Diese äußere Schicht besteht aus zwei schraubig gewundenen, parallel laufenden, an ihren Enden löffelförmigen Bändern (Elateren), die sich beim Austrocknen der Sporen ablösen, aber an einer Stelle in ihrer Mitte miteinander und mit dem Exospor verbunden bleiben; sie breiten sich aus, legen sich bei Zutritt von Feuchtigkeit aber wieder zusammen und mögen durch ihre hygroskopischen Bewegungen dazu dienen, die Sporen, die meist diözische Prothallien bilden, gruppenweise zu verketten und zu verbreiten (Fig. 488 D, E).
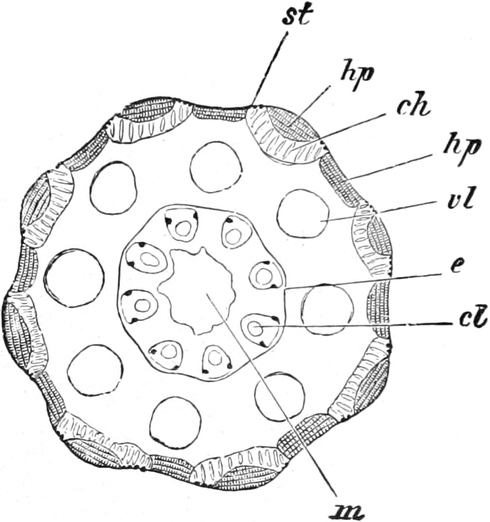
Fig. 487. Equisetum arvense. Stengel quer, m lysigene Markhöhle, e Endodermis, ci Karinalhöhlen in den kollateralen Leitbündeln, vl Vallekularhöhlen, hp Sklerenchymstränge in den Riefen und Rippen, ch chlorophyllführendes Gewebe der Rinde, st Spaltöffnungsreihen. Vergr. 11. Nach STRASBURGER.
Bei gewissen Schachtelhalmen hat sich ein Unterschied in der Ausgestaltung der oberirdischen Halme herausgebildet. Teils bleiben sie steril und verzweigen sich reichlich, teils tragen sie an ihrem Ende die Blüten und verzweigen sich dann später sparsamer oder überhaupt nicht in unfruchtbare Seitenzweige. Am ausgeprägtesten ist dieser Unterschied bei Equisetum arvense und E. Telmateja, bei denen die fertilen Halme ganz einfach sind, an ihrem Ende mit einer einzigen Blüte abschließen (Fig. 488) und sich auch durch den Mangel des Chlorophylls und ihre blaßrötliche Färbung von den vegetativen Halmen unterscheiden. Sie verhalten sich also gleichsam wie parasitische Sprosse, die aus dem Rhizom ihre Nahrung beziehen.
Das im tropischen Amerika einheimische Equisetum giganteum ist die größte Art der Gattung, sie erhebt sich kletternd im Gesträuch mit ihren 2 cm dicken, quirlig verzweigten Halmen bis über 12 m Höhe.
Die Sporen sind sämtlich von gleicher Beschaffenheit und keimen zu thallösen Prothallien aus. Diese sind meist diözisch (Fig. 489); weibliche bedürfen zu ihrer Entwicklung guter Ernährung, bei schlechter bilden sie Antheridien. Die weiblichen Prothallien sind bedeutend größer als die männlichen und verzweigen sich reichlicher in dorsiventrale krause Lappen, an deren Grunde die Archegonien sitzen. Diese sind ganz ähnlich wie bei den Farnen beschaffen, nur sind die obersten Zellen des aus vier Zellreihen bestehenden Halses stark verlängert und biegen sich bei der Öffnung des Archegoniums stark nach außen um. Die Spermien besitzen wie bei den Farnen zahlreiche Zilien (Fig. 489 III). Am Embryo treten die ersten Blätter gleich in einem Quirl angeordnet auf und umwallen ringförmig den Stammscheitel, der mit dreiseitiger Scheitelzelle weiterwächst (Fig. 489 IV, 100, 101).
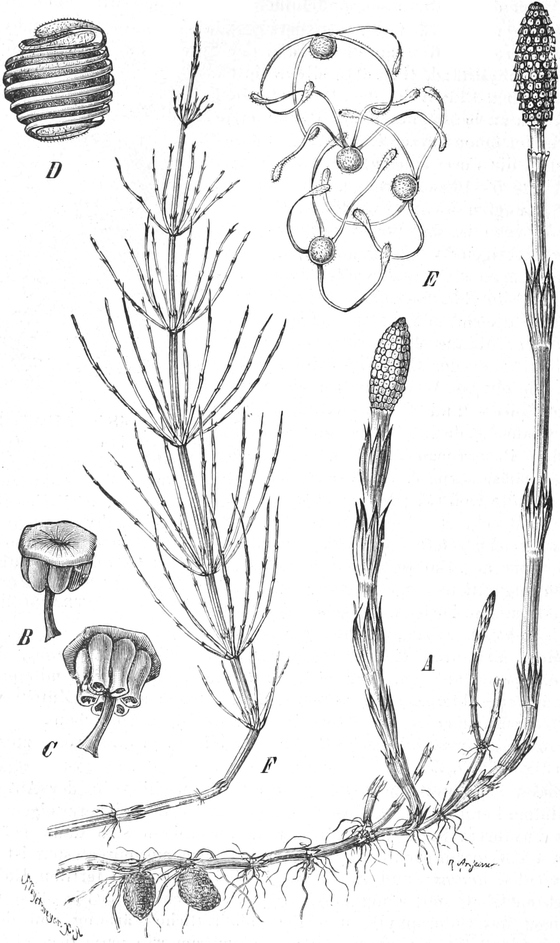
Fig. 488. Equisetum arvense. A Fertile Halme, dem knollentragenden Rhizom entspringend, mit vegetativem Halm noch in der Knospe. F unfruchtbarer vegetativer Halm. B und C Sporophylle mit Sporangien, in C aufgesprungen. D Spore mit den beiden Spiralbändern (Elateren) des Perispors. E Sporen mit den in trockenem Zustand ausgebreiteten Spiralbändern. A, F 1⁄2 nat. Gr. B, C, D, E Vergr.
Die äußeren Membranen der Stengelepidermis sind bei den Schachtelhalmen mehr oder weniger stark mit Kieselsäure imprägniert, in besonderem Maße bei Equisetum hiemale, das ebenso wie auch E. arvense infolgedessen zum Scheuern von metallenen Gefäßen, zum Polieren von Holz und zu ähnlichen Zwecken Verwendung findet.
Giftig: In einigen Equisetum-Arten sind giftig wirkende Stoffe nachgewiesen. Heu mit viel Schachtelhalmen untermischt ist für das Vieh schädlich.
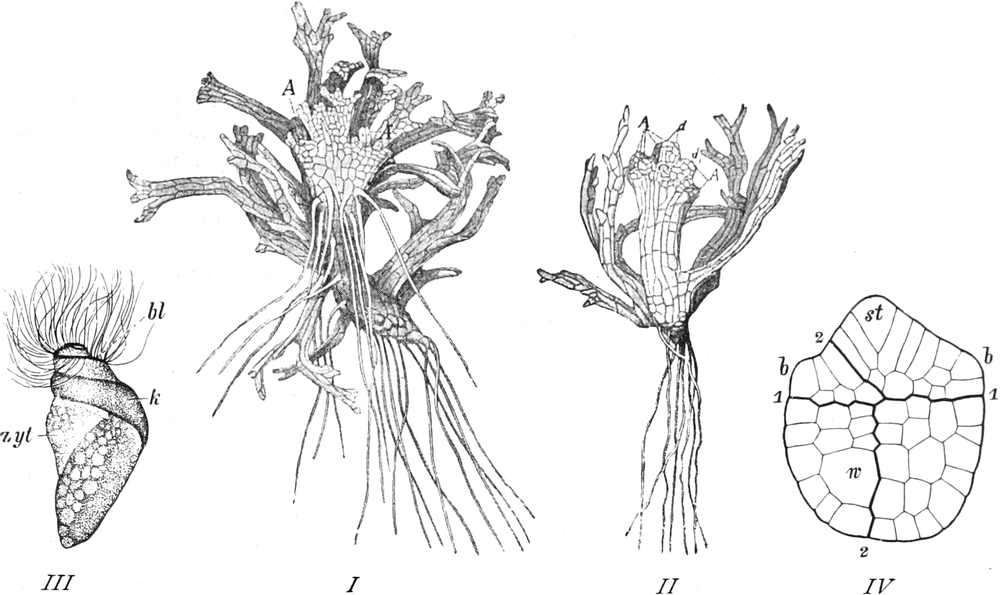
Fig. 489. I, II Equisetum pratense. I Weibliches Prothallium von der Unterseite, mit Archegonien A. II Männliches Prothallium mit Antheridien A, d deren Deckzellen. I Vergr. 17. II Vergr. 12. Nach GOEBEL. III Equisetum arvense. Spermium, k Kern, bl Blepharoplast (Zilienbildner) und Zilien, zyt Zytoplasma. Vergr. ca. 1250. Nach SHARP. IV Equisetum arvense. Embryo. 1, 2 Oktantenwände. Aus der über der Basalwand 1 liegenden Hälfte entsteht der Stamm st und der erste Blattquirl b, aus der unteren Hälfte die Wurzel w und der Fuß. Vergr. 165. Nach SADEBECK.
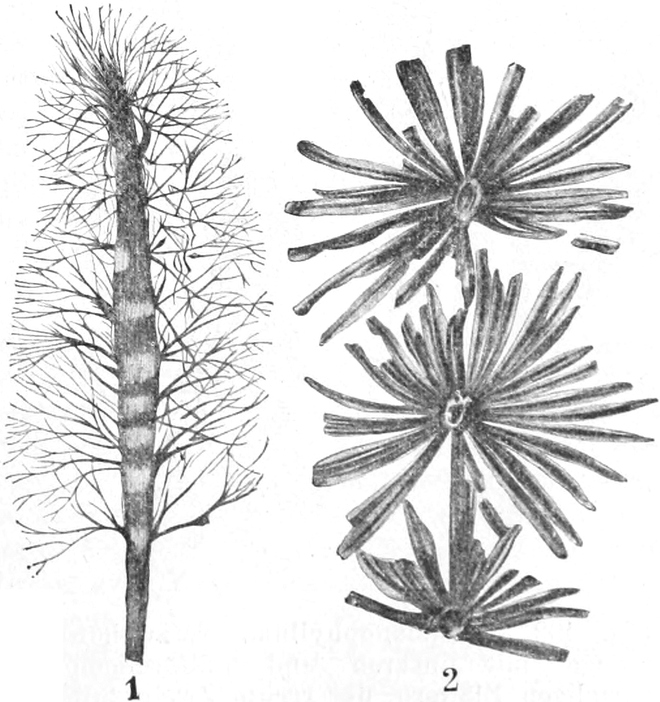
Fig. 490. 1 Asterocalamites radiatus, nach STUR. 2 Annularia stellata, nach SEWARD. Aus LOTSY, Botan. Stammesgeschichte.
Offizinell: Die sterilen Halme von Equisetum arvense liefern Herba Equiseti (Pharm. austr.).
2. Ordnung. Calamariaceae[450]. Die ausgestorbenen, im Paläozoikum sehr reich entwickelten, besonders im Karbon sehr häufigen Calamariaceen waren habituell den Schachtelhalmen ähnliche, in einzelnen Arten wohl bis 30 m hohe, baumartige Gewächse, deren mit Periderm bedeckte, hohle, monopodiale, quirlig verzweigte Stämme (Calamites) sekundäres Dickenwachstum aufwiesen. Ihre Blätter (Annularia, Fig. 490) standen in abwechselnden Quirlen, waren schmal-lanzettlich, anfangs zu einer Scheide verbunden, später sich trennend und in dem ältesten Typus Asterocalamites (Fig. 490) noch dichotom geteilt, also farnblattähnlich. Die Sporangienstände hatten bei dieser Gattung ähnlichen Bau wie bei Equisetum, bei den übrigen Vertretern aber waren sie zusammengesetzt aus abwechselnden Quirlen von Schuppenblättern, zwischen denen superponierte Quirle von besonderen Sporangienträgern standen. Jeder solcher Träger hatte die Form eines gestielten Schildes und trug unter diesem vier Sporangien (Fig. 491). Bei Calamostachys waren die Sporangienträger ein Stück über die zugehörigen Sporophylle in die Höhe gerückt, bei Palaeostachya standen sie in den Achseln dieser; sie können morphologisch als besondere Auswüchse der schuppenförmigen Sporophylle angesehen werden. Interessant ist die Tatsache, daß unter den Calamarien neben isosporen bereits heterospore Arten vertreten waren.
Klasse III. Sphenophyllinae, Keilblattgewächse[450].
Diese kleine, ausschließlich paläozoische Klasse nimmt eine vermittelnde Stellung zwischen Equisetinen und Lycopodinen ein, schließt sich aber im vegetativen Aufbau an erstere näher an.
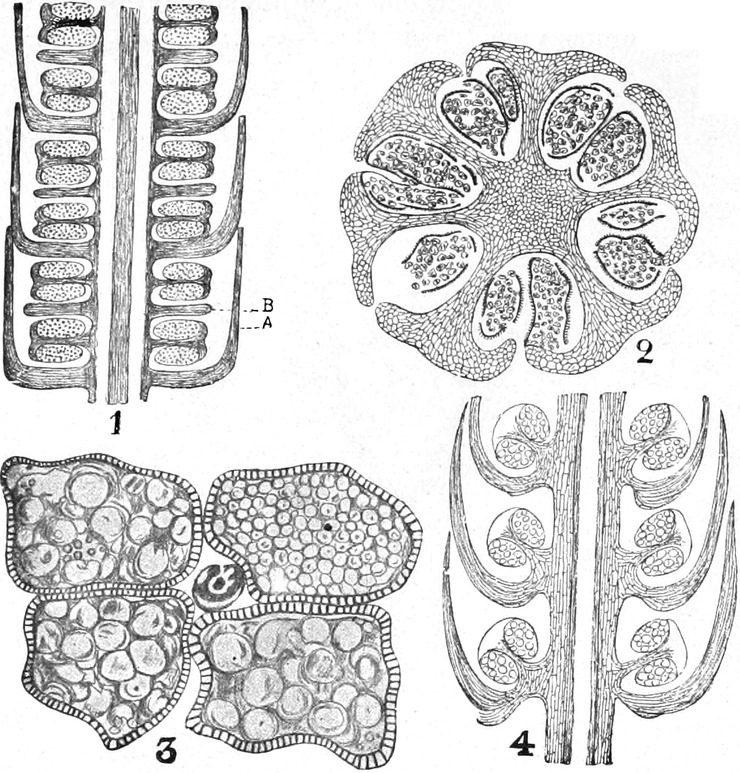
Fig. 491. 1 Calamostachys Binneyana. Sporangienstand im Längsschnitt, 2 im Querschnitt. 3 Calamostachys Casheana. Querschnitt durch den Stiel eines Sporangienträgers, das drei Makrosporangien und ein Mikrosporangium trägt. 4 Palaeostachya. Sporangienstand mit axillären Sporangienträgern, Längsschnitt. Nach SCOTT und HICKLING. Aus LOTSY, Botanische Stammesgeschichte.
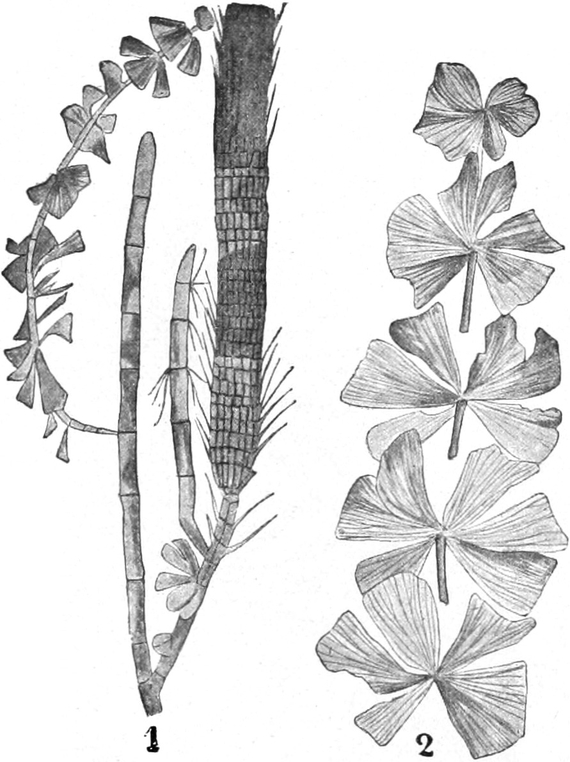
Fig. 492. 1 Sphenophyllum, verzweigte Stengel mit linearen und keilförmigen wirteligen Blättern, der rechte Zweig mit längerem Sporangiumstand. Nach SCOTT. 2 S. emarginatum. Nach SEWARD. Aus LOTSY, Bot. Stammesgeschichte.
Die Sphenophyllinen waren durch zwei Gattungen vertreten. Cheirostrobus aus dem untersten Karbon besaß reich gegliederte Blüten von ähnlichem Bau wie bei den Calamarien. Die vom Devon bis Perm verbreiteten Sphenophyllum-Arten waren krautige Landpflanzen, anscheinend Kletterpflanzen, deren langgliedrige verzweigte Stengel ein axiles dreistrahliges markloses Leitbündel mit sekundärem Zuwachs aufwiesen. Sie waren mit übereinander stehenden, meist sechszähligen Quirlen keilförmiger oder gabelig geteilter Blätter, und mit ährenförmigen Equisetum-ähnlichen Blüten, deren Sporophylle ein bis vier Sporangien trugen, ausgestattet (Fig. 492).
Die Lycopodinen unterscheiden sich durch den Habitus ihrer Sporophyten und ihre Sporangienentwicklung scharf von den übrigen Pteridophyten.
Sie waren bereits in der paläozoischen Periode reich vertreten und umfaßten auch baumartige Vertreter hauptsächlich in den ausgestorbenen Ordnungen der Sigillariaceae und Lepidodendraceae.
Die heute noch lebenden zahlreichen Arten sind sämtlich krautige Gewächse und gehören den Gattungen Lycopodium, Selaginella, Psilotum und Tmesipteris, Isoëtes an, die sich auf vier Ordnungen verteilen.
Charakteristisch für die Sporophyten ist die gabelige Verzweigung ihrer Wurzeln und Stengel (Fig. 144 u. 146), ferner die einfache Form ihrer Blätter. Die beiden erstgenannten Gattungen besitzen gestreckte Stengel und kleine Blättchen, Isoëtes dagegen gestauchte knollige Stengel und lange pfriemliche Blätter. Während bei Filicinen und Equisetinen die Sporophylle stets zahlreiche Sporangien erzeugen, tragen sie hier diese Organe stets in Einzahl am Grunde der Blattoberseite oder in der Blattachsel. Bei manchen Lycopodinen sind die Sporophylle von den sterilen Blättern kaum verschieden, bei den meisten aber anders gestaltet und an den Sproßenden zu ährenförmigen Sporophyllständen oder Blüten, ähnlich wie bei Equisetum, vereinigt. Die Sporangien sind im Verhältnis zu den Blättern relativ groß und besitzen eine derbe mehrschichtige Wand ohne Ring. Die innerste Schicht der Wandung, die Tapetenschicht, wird nicht aufgelöst. Daher weist auch die Membran der Sporen kein ihr aufgelagertes Perispor auf. Der Raum zwischen den sich entwickelnden Sporenzellen ist nur mit schleimiger, ihre Ernährung vermittelnder Flüssigkeit erfüllt. Die Sporangien öffnen sich meist mit zwei Klappen, die in einer über den Scheitel laufenden Spalte sich voneinander trennen. Die Spalten sind durch zwei Reihen dünn bleibender Zellen vorgebildet. Nur bei Isoëtes werden die Sporen durch Verwesung der Sporangiumwand frei. Während Lycopodium und Psilotum isospor sind, treffen wir bei Selaginella und Isoëtes Heterosporie an und zugleich eine weitgehende Reduktion und sehr eigenartige Ausbildung der Prothallien; bei Lycopodium und Psilotum dagegen sind die Prothallien wohl entwickelt und zeigen gewisse Ähnlichkeiten mit denen der Ophioglossaceen. Man kann die vereinfachten Prothallien der Selaginellen und Isoëten mit Jugendzuständen der Lycopodium-Prothallien vergleichen, die dann keine vegetative Weiterentwicklung erfahren hätten, sondern frühzeitig zur Gametenbildung gelangt wären.
Lycopodiaceen und Selaginellaceen stehen einander näher in der Gliederung des Embryos, der sich bei beiden durch den Besitz eines Embryoträgers auszeichnet, und in der primitiveren Struktur ihrer nur zwei Zilien tragenden Spermien. Die Isoëtaceen dagegen zeichnen sich durch trägerlosen Embryo und ebenso wie die Psilotaceen durch vielzilige Spermien aus. Danach unterscheiden wir Lycopodinae biciliatae und pluriciliatae. Schon im Karbon waren krautige Lycopodinen vorhanden, die Vorläufer von Lycopodium und Selaginella, während Isoëtes erst aus der unteren Kreide sicher bekannt ist, die Psilotaceen reichen bis in das Devon zurück.
1. Ordnung. Lycopodiaceae[440]. Die zahlreichen Arten der Gattung Lycopodium, Bärlapp, sind krautige, meist erdbewohnende Gewächse; in den Tropen gibt es auch viele epiphytische Formen mit schlaff herabhängenden Sproßbüscheln. Eine der häufigsten Arten unserer Flora ist Lycopodium clavatum (Fig. 493). Der Stengel dieser wie auch anderer Arten kriecht weit über den Boden hin, gabelt sich in aufsteigende Äste und ist dicht mit linealpfriemlichen kleinen Blättchen besetzt. Auf der Unterseite der Stengel entspringen dichotom verzweigte Wurzeln. Die ährenförmigen Blüten stehen zu zwei oder mehreren an den Enden von aufrechten, dichotom verzweigten Stengeln und tragen breit schuppenförmige, lang zugespitzte Sporophylle, die am Grunde ihrer Oberseite je ein großes nierenförmiges, zweiklappig aufspringendes Sporangium mit zahlreichen winzigen Sporen erzeugen (Fig. 493 H). Das einheimische Lycopodium Selago weicht in seinem Habitus von den übrigen Arten ab: seine gegabelten Stengel stehen alle aufrecht, und die Sporophyllstände sind von der vegetativen Region der Zweige nicht abgesetzt.
Die Sporangien sind isospor. Da die Sporen bis zu ihrer Reife in Tetraden verbunden bleiben, behalten sie ihre kugeltetraëdrische Gestalt bei. Ihr Exospor ist mit netzförmigen Verdickungsleisten versehen oder mit rundlichen Grübchen getüpfelt (Fig. 493 J, K).
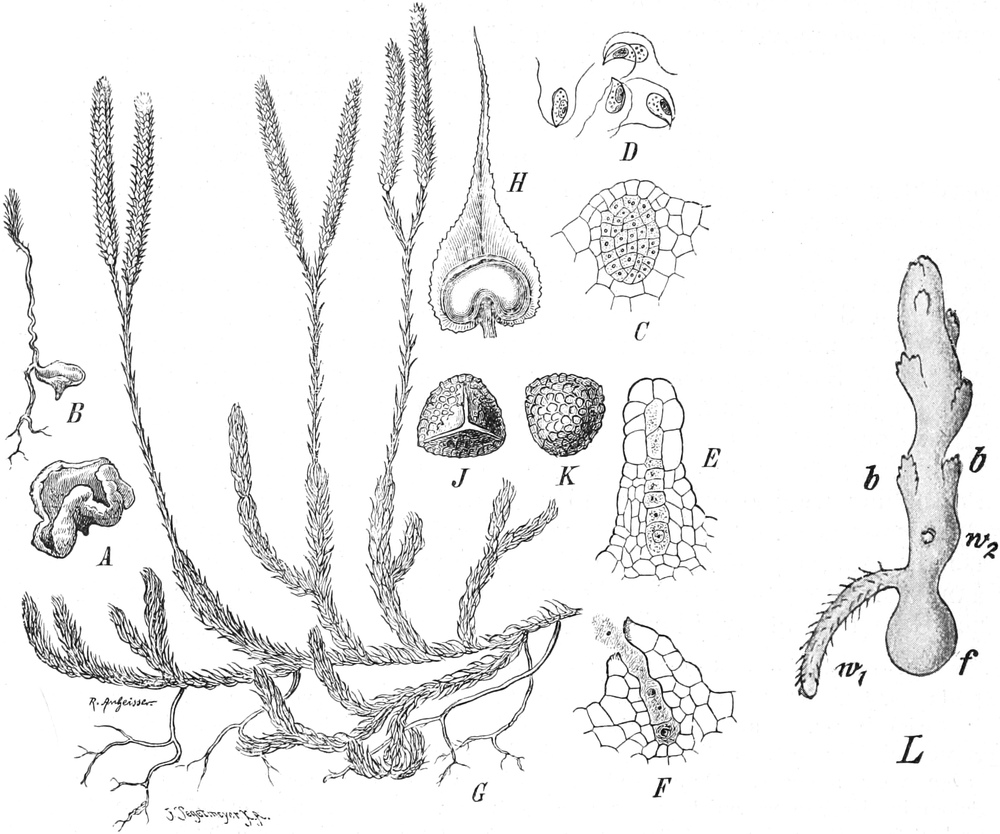
Fig. 493. Lycopodium clavatum. A Älteres Prothallium. B Prothallium mit junger Pflanze. C Antheridium, noch geschlossen, Längsschnitt. D Spermien. E Jüngeres, noch geschlossenes, F befruchtungsreifes geöffnetes Archegonium. G Sporangientragende Pflanze. 1⁄2 nat. Gr. H Ein Sporophyll mit aufgesprungenem Sporangium. J und K Sporen in zwei Ansichten. L Junge unterirdische chlorophyllfreie Keimpflanze, mit Fuß f, Wurzel w und Schuppenblättern b. Vergr. 10. A–F, L nach BRUCHMANN.
Während die Sporophyten der Lycopodien im wesentlichen übereinstimmenden Bau aufweisen, zeigen dagegen die aus den Sporen hervorgehenden Prothallien bemerkenswerte Verschiedenheiten. Bei L. clavatum (Fig. 493 A, B) und dem nahe verwandten L. annotinum stellen sie unterirdische, saprophytisch lebende, weißliche Knöllchen dar, die anfangs kreiselförmig gestaltet, später durch Auswachsen der Randpartien zu vielgestaltigen, becherförmigen, wulstig gelappten, bis etwa 2 cm großen Gewebekörpern werden, die mit langen, der Wasseraufnahme dienenden Haaren oder Rhizoïden besetzt sind und auf ihrer oberen Fläche zahlreiche Antheridien und Archegonien tragen. Die Sporen keimen erst nach 6–7 Jahren und liefern auf Kosten ihrer Reservestoffe zunächst einen fünfzelligen Keimling, der nach einer Ruhezeit erst dann sich weiterentwickelt, wenn Pilzfäden in seine unteren Zellen eintreten (Fig. 494 A, B). Die endophytischen Pilzfäden bewohnen auch in älteren Prothallien nur die peripheren Gewebe, zum Teil treten sie aber wieder ins Freie aus den als Durchlaßzellen dienenden Fußzellen der Wurzelhaare und umspinnen diese [441]. Nach 12–15 Jahren tritt erst die Geschlechtsreife ein, und die gesamte Lebensdauer der Prothallien mag etwa 20 Jahre betragen. Bei L. complanatum (Fig. 494 C) sind diese Gewebekörper rübenförmige, bei L. Selago an der Basis kegelförmige, dann zylindrische dorsiventrale Knöllchen, die bei letzterer Art auch an der Oberfläche des Erdbodens sich entwickeln können und dann ergrünen. Anders dagegen verhält sich das auf feuchtem Torfboden lebende kleine L. inundatum unserer Flora und das tropische mit aufrechten, reichverzweigten Sprossen versehene L. cernuum, deren Prothallien kleine, im Boden steckende und mit Rhizoïden befestigte chlorophyllarme Gewebekörper vorstellen, die am oberen Ende grüne, oberirdische Thalluslappen entsenden. Die Archegonien entspringen am Grunde dieser Thalluslappen, die Antheridien auch auf den Lappen selbst. Alle Lycopodiumprothallien enthalten in ihren peripheren Geweben endophytische Pilzfäden nach Art der Mykorrhizen.
Die Prothallien sind sämtlich monözisch. Die Antheridien (Fig. 493 C) sind in das Gewebe etwas eingesenkt und umschließen zahlreiche Spermienzellen; jede Zelle entläßt ein ovales, unter seiner Spitze zwei Zilien tragendes Spermium (Fig. 493 D). Die Archegonien (Fig. 493 E, F) sind ähnlich wie bei den Farnen beschaffen, an ihrem Halsteil gehen die obersten Zellen beim Öffnen zugrunde. Die Zahl der Halskanalzellen ist bei den einzelnen Arten verschieden (1, 3 bis 5, oder 6 bis 10, sogar bis 20).
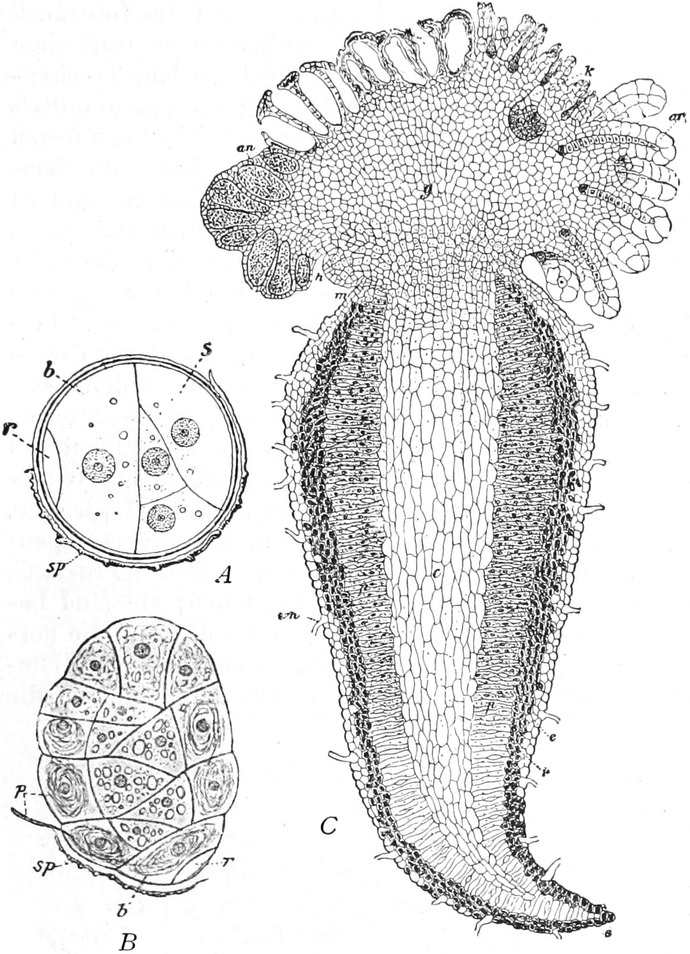
Fig. 494. Lycopodium annotinum. A Fünfzelliger farbloser Sporenkeimling, mit Rhizoïdzelle r, Basalzelle b, Scheitelzelle s, Sporenhaut sp. Vergr. 580. B Junger Keimling, in dessen unteren Zellen der endophytische Pilz p wohnt. Die Scheitelzelle in drei Scheitelmeristemzellen geteilt. Vergr. 470. — Lyc. complanatum. C Reifes Prothallium mit Antheridien an, Archegonien ar, k junger Embryo. Vergr. 26. Nach BRUCHMANN.
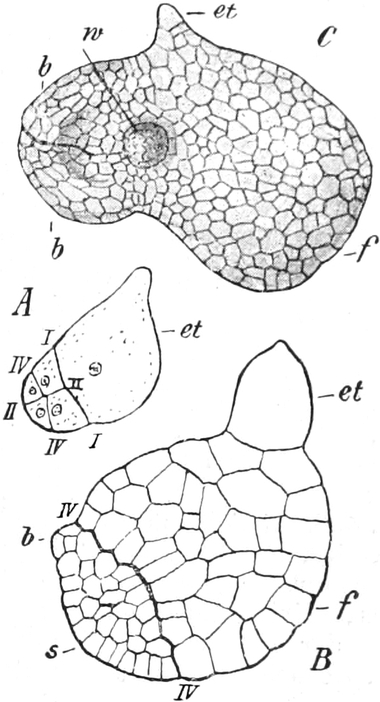
Fig. 495. Lycopodium complanatum. Embryoentwicklung. A Embryo mit den ersten Teilungen; die Basalwand I teilt die Anlage des Embryoträgers et von der Anlage des Embryokörpers ab, die Transversalwände II und III (letztere in der Ebene des Schnittes) sowie die Querwand IV liefern zwei vierzellige Stockwerke, von denen das zwischen I und IV gelegene den Fuß liefert, das unterste den Sproßteil. Vergr. 112. B Mittleres Stadium, s Stammscheitel, b Blattanlage, f Fuß. Vergr. 112. C Embryo kurz vor dem Herauswachsen aus dem Prothallium. bb die beiden ersten, den Stammscheitel bedeckenden Blätter, w die erste Wurzel. Vergr. 40. Nach BRUCHMANN.
Der Embryo bleibt während seiner Entwicklung (Fig. 495) im Prothallium eingeschlossen. Er besitzt einen kugeligen, bei L. complanatum keulenförmigen und warzigen Fuß als Saugorgan für die Keimpflanze; unter dem Fuße differenziert sich die Anlage des Sprosses, dessen erste Blätter schuppenartig sind und aus dessen basalem Teile die erste Wurzel hervorkommt. Zwischen Sproß und Fuß befindet sich der Embryoträger oder Suspensor, ein Gebilde, das als anfängliches Saug- und Ernährungsorgan des Embryos dient.
Offizinell sind die Sporen von Lycopodium clavatum und anderen Arten (Lycopodium, Pharm. germ., austr., helv.). Sie werden als Hexenmehl bezeichnet.
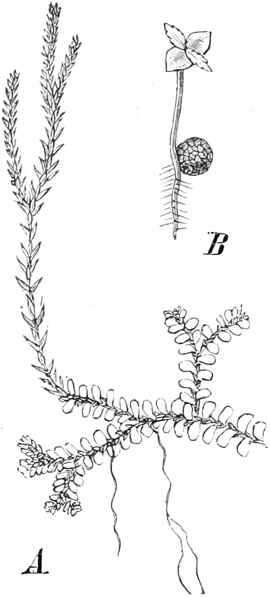
Fig. 496. A Selaginella helvetica. Nat. Gr. Nach der Natur. B S. Kraussiana, Keimpflänzchen mit der Makrospore. Vgr. Nach BISCHOFF.
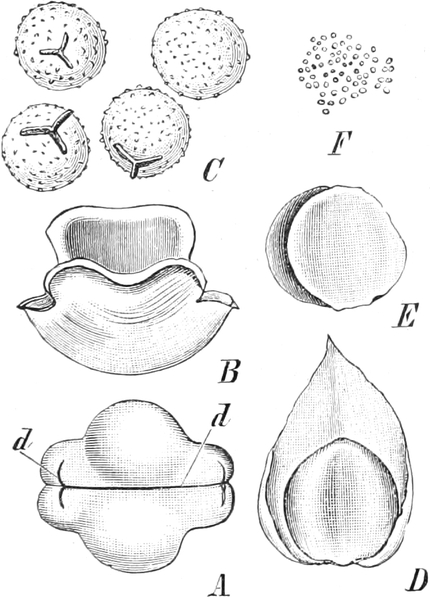
Fig. 497. Selaginella helvetica. A Makrosporangium von oben mit Dehiszenzlinie d. B Geöffnet von der Seite, die vier Makrosporen C ausgeschleudert. D Mikrosporangium in der Achsel des Schuppenblattes von innen. E Geöffnet. F Mikrosporen. Vergr. ca. 15.
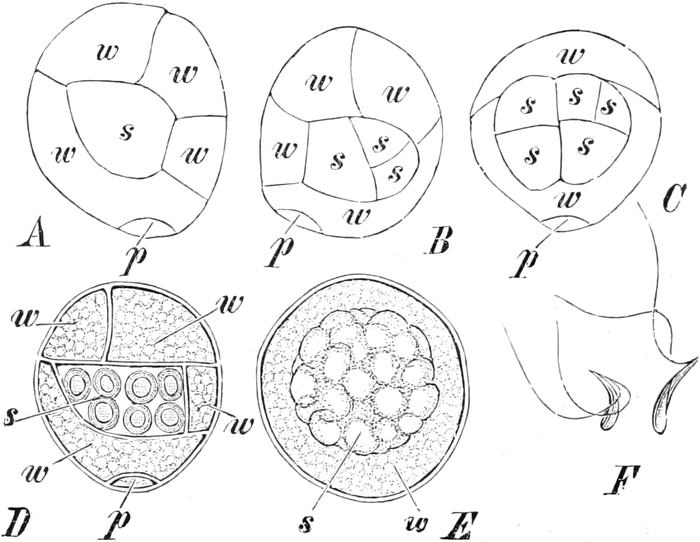
Fig. 498. A–E Selaginella stolonifera. Vergr. 640. Keimung der Mikrosporen, aufeinander folgende Stadien, p Prothalliumzelle, als Rhizoïdzelle aufzufassen, w Antheridiumwandzellen, s spermatogene Zellen, A, B, D von der Seite, C vom Rücken. In E die Prothalliumzelle nicht sichtbar, die Wandzellen, aufgelöst, umgeben die Spermienzellen. F Sel. cuspidata. Spermien. Vergr. 780. Nach BELAJEFF.
2. Ordnung. Selaginellaceae[442]. Die Gattung Selaginella ist bei uns nur durch wenige, in den Tropen dagegen durch zahlreiche Formen vertreten. Diese besitzen teils niederliegende, teils aufrechte, reich gabelig, mit sympodialer Ausbildung verzweigte Stengel; einige sind rasenbildend, andere klettern sogar mit mehrere Meter langem Stengel im Gesträuch empor. Gewisse xerophile Arten (S. lepidophylla im tropischen Amerika u. a.) können monatelang, ja mehrere Jahre lang Trockenheit ertragen, wobei sie ihre rosettig angeordneten Sprosse mittels Kohäsionsmechanismus zusammenschließen; bei Eintritt von Regen breiten sie sich wieder aus[443]. Im allgemeinen haben die Selaginellen ähnlichen Habitus wie die Lycopodien. Der Stengel ist mit kleinen, schraubig oder dekussiert in vier Zeilen stehenden, schuppenartigen Blättchen, und zwar meist in dorsiventraler Ausbildung besetzt, so bei der in den Alpen heimischen Selaginella helvetica (Fig. 496), deren Stengel zwei Reihen kleiner, sog. Oberblätter und zwei Reihen diesen gegenüberstehender größerer Unterblätter trägt (vgl. auch Fig. 141). Eigentümlich ist den Selaginellen, daß ihre Wurzeln nicht unmittelbar dem beblätterten Stengel, sondern zu je einer oder mehreren an den Enden von kürzeren oder längeren, verzweigten oder unverzweigten Wurzelträgern[444] endogen entspringen. Diese sind zylindrische, blattlose nach unten wachsende, wurzelähnliche Sprosse, eigenartige Organe, die paarweise stets an Gabelungsstellen der Stengel, gekreuzt mit dessen Gabelästen exogen entstehen; sie sind befähigt, zu beblätterten Sprossen weiterzuwachsen, wenn die normalen Sprosse zurückgeschnitten werden. Schon an dem Keimling entstehen ganz kurze Wurzelträger, aus deren Spitzen die ersten Wurzeln endogen sich bilden. Die Blätter der Selaginellen sind ausgezeichnet durch eine am Grunde der Blattoberseite entspringende kleine häutige Ligula, die als Organ der Wasseraufnahme ein sehr rasches Aufsaugen von Regentropfen durch die beblätterten Sprosse vermittelt[445]. Die epidermalen Assimilationszellen der Blätter führen bei manchen Arten, ähnlich wie bei Anthoceros, nur je einen großen muldenförmigen Chloroplasten[446].
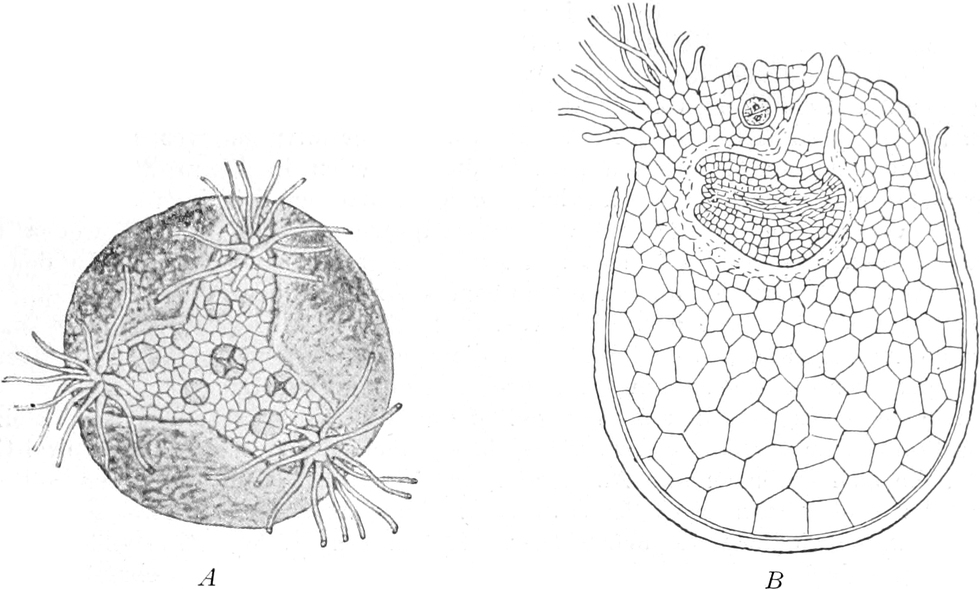
Fig. 499. Selaginella Martensii. A Aufgesprungene Makrospore von oben. Prothallium mit drei Rhizoïdhöckern und mehreren Archegonien. Vergr. 112. B Längsschnitt, zwei Archegonien mit sich entwickelnden Embryonen. Vergr. 112. Nach BRUCHMANN.
Die endständigen Sporophyllstände oder Blüten sind einfach oder verzweigt, vierkantig radiär, seltener dorsiventral. Jedes Sporophyll trägt nur ein über der Blattachsel aus dem Stengel entspringendes Sporangium. In ein und derselben Blüte treten sowohl Makro- als auch Mikrosporangien auf. In den ersteren (Fig. 497 A–C) gehen die angelegten Sporenmutterzellen alle zugrunde bis auf eine, welche die vier großen, paarweise gekreuzten und die Sporangienwand buckelig vorwölbenden Sporen liefert. Das durch einen Kohäsionsmechanismus erfolgende Aufspringen vollzieht sich auf vorbezeichneter Dehiszenzlinie mit zwei auf einem basalen, kahnförmigen Teile stehenden, sich zurückkrümmenden Klappen; durch den Druck des sich verengenden Kahnteils werden die Sporen dann herausgeschleudert. In den flachen Mikrosporangien sind zahlreiche kleine Sporen vorhanden. Die Öffnung geschieht hier in ähnlicher Weise, nur ist der kahnförmige Teil viel kürzer, die Klappen reichen fast bis zur Basis.
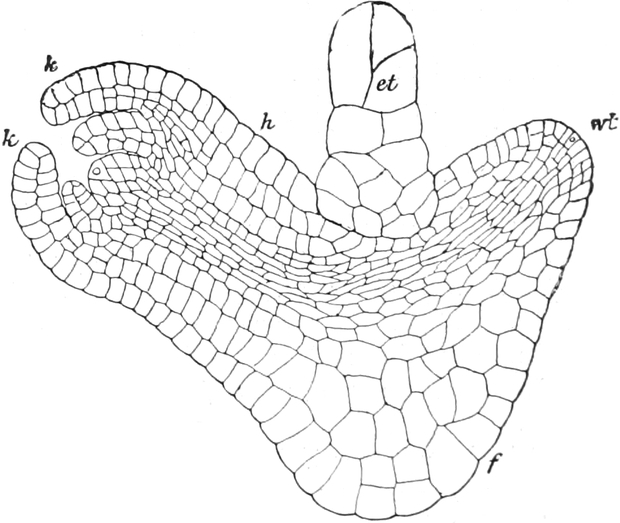
Fig. 500. Selaginella Martensii. Embryo vor dem Hervorbrechen aus dem Prothallium im Längsschnitt. f Fuß. wt Wurzelträger, et Embryoträger, k Keimblätter mit Ligula. Vergr. 150. Nach BRUCHMANN.
Die Mikrosporen beginnen ihre Weiterentwicklung schon innerhalb des Sporangiums. Die Sporenzelle teilt sich zunächst in eine kleine linsenförmige, der Rhizoïdzelle von Salvinia entsprechende Zelle, und in eine große Zelle, die nacheinander in acht sterile Prothallien- oder Wandzellen und zwei oder vier zentrale spermatogene Zellen zerlegt wird (Fig. 498 A). Durch weitere Teilung der letzteren Zellen, die ein einziges Antheridium vorstellen, entstehen die sich abrundenden Spermienmutterzellen in größerer Anzahl (B–D). Die Wandzellen lösen alsdann ihre Wände auf und werden zu einer Schleimschicht, in welcher die zentrale Masse der Spermienzellen eingebettet liegt (E). Die kleine Prothalliumzelle (p) bleibt hingegen erhalten. Das ganze männliche Prothallium ist bis zu diesem Stadium von der Mikrosporenhaut noch umschlossen; schließlich bricht diese auf und die Spermienzellen werden frei, um die keulenförmigen, an der Spitze mit zwei langen Zilien versehenen Samenfäden zu entlassen.
Auch die Makrosporen beginnen, allerdings nicht bei allen Arten, ihre Weiterentwicklung schon, wenn sie noch im Sporangium eingeschlossen liegen. Der Zellkern teilt sich in Tochterkerne, die in dem Wandplasma am Scheitel sich verteilen, und nun erfolgt hier die Ausbildung von Zellwänden. So wird vom Scheitel bis zur Basis fortschreitend die Spore mit großen Prothalliumzellen angefüllt; zugleich beginnt aber auch in derselben Richtung die weitere Teilung dieser Zellen in kleinzelliges Gewebe. Bei einigen Arten wird zunächst nur am Scheitel eine kleinzellige Scheibe von Zellen angelegt, die durch verdickte getüpfelte Innenwände (Diaphragma) sich von der großen unteren Zelle abgrenzen, und diese teilt sich erst später in großzelliges Gewebe. In dem kleinzelligen Gewebe am Scheitel werden einige wenige Archegonien angelegt, und zwar manchmal bereits, wenn die Spore noch nicht vom Prothalliumgewebe ganz ausgefüllt ist. Meist werden die Archegonien erst gebildet, wenn die Sporen aus dem Sporangium entleert sind; öfters findet aber die Befruchtung auch noch auf der Mutterpflanze statt.
Die Sporenwand springt am Scheitel in den drei Sporenkanten auf; das kleinzellige farblose Prothallium tritt etwas hervor und bildet auch einige Rhizoïden auf drei Gewebehöckern, die zum Sprengen und Aufsperren der Wand wie zum Festhalten von Wasser dienen. Es erfolgt dann die Befruchtung von einem oder wenigen Archegonien und die direkte Weiterentwicklung der befruchteten Eizellen zum Embryo (Fig. 499).
Die Entwicklung des Embryos, an dem wir den ein- oder mehrzelligen Embryoträger, den Sproßvegetationskegel mit den ersten Blattanlagen, die ersten Wurzelträger und den Fuß unterscheiden, verläuft in auffallend verschiedener Weise innerhalb der Gattung. Die befruchtete Eizelle teilt sich zunächst quer; aus der oberen, hypobasalen Zelle geht bei S. Martensii und Verwandten der Embryoträger allein hervor, aus der unteren, epibasalen Zelle dagegen der Hauptkörper des Embryos (Fig. 500); bei S. denticulata, helvetica und den meisten anderen Arten aber liefert die obere Zelle außer dem Embryoträger auch noch den Fuß und Wurzelträger. Der Sproßscheitel mit dem ersten Blattpaar wächst nach oben, die Wurzel abwärts; die junge Keimpflanze bleibt mit ihrem Fuß in dem Prothalliumgewebe der Makrospore stecken (Fig. 496 B). Bei einigen Arten (S. rubricaulis, spinulosa, helvetica) bleiben die Archegonien geschlossen. und die Eizelle entwickelt sich parthenogenetisch zum Embryo. Bei S. Kraussiana und Verwandten ist der Embryoträger nach BRUCHMANN rückgebildet, aber in seiner Funktion ersetzt durch einen eigenartigen Embryoschlauch, der aus der Membran der Eimutterzelle hervorgehen soll; in diesem soll sich die Anlage des Embryos abgrenzen und dann in das Nährgewebe hinabwandern.
3. Ordnung. Psilotaceae[447]. Von jetzt lebenden Formen gehören zu dieser anscheinend sehr primitiven Ordnung nur Psilotum mit zwei tropischen Arten und Tmesipteris mit einer australischen Art. Bemerkenswert ist das gänzliche Fehlen von Wurzeln. Die gabelig verzweigten Sprosse tragen in schraubiger Anordnung kleine einfache Blätter und in ihren oberen Teilen die Sporophylle, die stets tief gegabelt sind und auf ihrer Innenseite am Grunde je ein derbwandiges zwei- oder dreifächeriges Sporangium besitzen.
Die in neuerer Zeit erst bekannt gewordenen Prothallien beider Gattungen sind im Substrat verborgene, zylindrische, verzweigte, farblose, von einem Phykomycetenmyzel nach Art der Mykorrhizen durchzogene, nur einige Millimeter große Thalli, die auf ihrer Oberfläche zahlreiche Antheridien und Archegonien entwickeln. Die Spermien haben zahlreiche Zilien.
Die im Devon vertretenen Rhyniaceen scheinen zu den Anfangsformen der Psilotaceen zu gehören und sind insofern besonders bemerkenswert, als ihr wurzelloser, gabelig verzweigter Stengel noch keine blattartigen Ausgliederungen zeigte, äußerlich also noch einem Algenthallus glich, und an seinen Enden Sporangien trug, die bei Hornea eine Columella, ähnlich wie die Laubmoossporogone, aufwiesen[448].
4. Ordnung. Isoëtaceae[449]. Hierher gehört nur die Gattung Isoëtes, Brachsenkraut, (Fig. 501), die als selbständiger Zweig der in früheren Erdperioden viel formenreicheren Klasse anzusehen ist. Die Isoëtes-Arten sind teils untergetauchte, teils auf feuchtem Boden lebende, perennierende Kräuter mit knolliger, gestauchter, selten dichotom gegabelter Achse, die nach unten ein Büschel von dichotom verzweigten Wurzeln, nach oben eine dichte Rosette von langen pfriemförmigen, von vier Luftkanälen durchzogenen Blättern trägt. Die Stammknolle zeichnet sich aus durch sekundäres Dickenwachstum mittels eines Kambiums, das nach außen Rinde, nach innen Tracheiden und aus Prismenzellen bestehendes Parenchym, das das hier fehlende Phloëm vertritt, abscheidet. Die Blätter verbreitern sich am Grunde zu einer breiten Scheide und sind an der Innenseite über ihrer Basis mit einer länglichen grubenartigen Vertiefung, der Fovea, versehen. Die Sporophylle tragen im Grunde der Fovea je ein Sporangium; im übrigen gleichen sie den Laubblättern, die den innersten Teil der Rosette einnehmen. Über der Fovea ist die Ligula, die hier als schleimbildendes Organ dient, als dreieckiges Häutchen mit eingesenkter Basis eingefügt. Im Habitus weicht also Isoëtes von den übrigen Ordnungen bedeutend ab, mit Selaginella ist ihr die Ligula gemeinsam; daher werden auch Isoëtes und Selaginella als Ligulatae bezeichnet, zu denen auch die fossilen Sigillariaceen und Lepidodendraceen gehören.
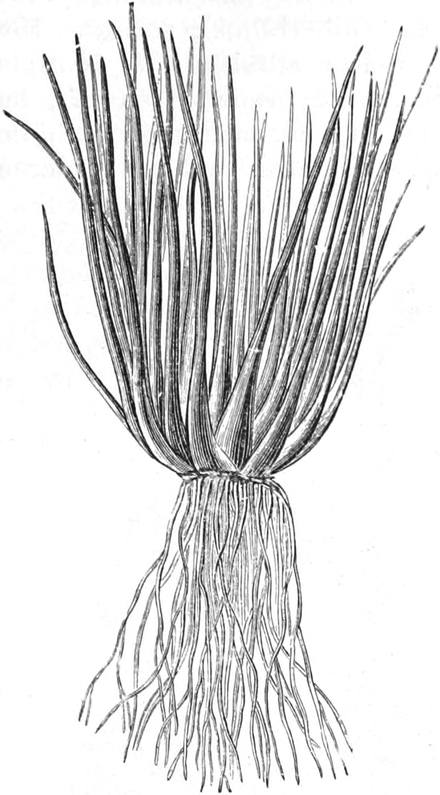
Fig. 501. Isoëtes lacustris. 1⁄2 nat. Gr.
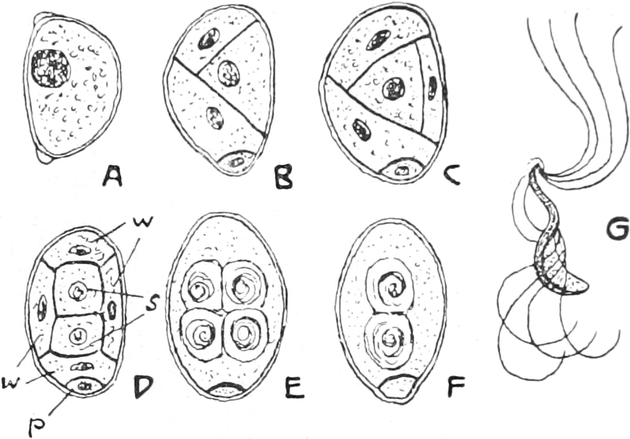
Fig. 502. A–F Isoëtes setacea. Vergr. 640. A Mikrospore von der Seite. B–D Teilung der Spore, p Prothalliumzelle, w die vier Wandzellen, s spermatogene Zellen. E Die Wandzellen aufgelöst, umgeben die vier Spermienzellen, Flächenansicht. F Desgleichen, Seitenansicht. G Isoëtes Malinverniana, Spermium. Vergr. 780. Nach BELAJEFF.
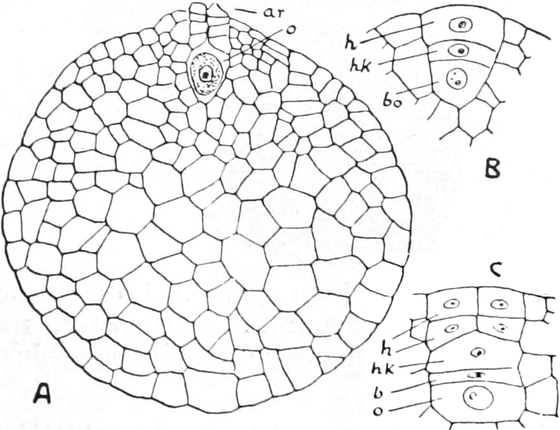
Fig. 503. Isoëtes echinospora. A Weibliches Prothallium mit Archegonium ar, Eizelle o. B, C Entwicklung des Archegoniums aus einer oberflächlichen Zelle, h Halszellen, hk Halskanalzelle, b Bauchkanalzelle, o Eizelle. Vergr. 250. Nach CAMPBELL.
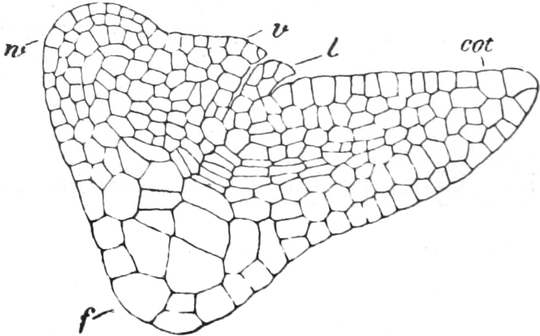
Fig. 504. Isoëtes echinospora. Embryo vor dem Herauswachsen aus dem Prothallium; Längsschnitt. cot Keimblatt, l Ligula, v Scheide an der Basis des Keimblattes, in dessen Achsel der Stammscheitel sich bildet, w Wurzel, f Fuß. Vergr. 200. Nach CAMPBELL.
Die Makrosporangien, die hier im Unterschied zu Selaginella noch zahlreiche Makrosporen ausbilden, sitzen an den äußeren Blättern der Rosette, die ihnen ähnlichen Mikrosporangien an den auf diesen folgenden Blättern. Beide sind hier von querverlaufenden sterilen Gewebesträngen, Trabeculae genannt, durchsetzt und unvollständig gefächert. Die Sporen werden erst durch Verwesung der Behälter frei.
Die Entwicklung der geschlechtlichen Generation geschieht in ähnlicher Weise wie bei Selaginella. Das reduzierte männliche Prothallium entwickelt sich bereits in der Spore (Fig. 502). Auch hier wird die Sporenzelle in eine kleine linsenförmige Prothalliumzelle (p) und eine größere, die Anlage eines einzigen Antheridiums, zerlegt. Die große Zelle teilt sich weiter in vier sterile Wandzellen (w), welche allseitig zwei zentrale spermatogene Zellen umschließen. Aus beiden entstehen je zwei Spermienzellen (E), im ganzen also vier, die nach dem Auflösen der Wandzellen und Aufplatzen der Sporenhülle nach außen gelangen; eine jede entläßt nun ihren schraubig gewundenen und am vorderen Ende mit einem Zilienbüschel besetzten Samenfaden (G).
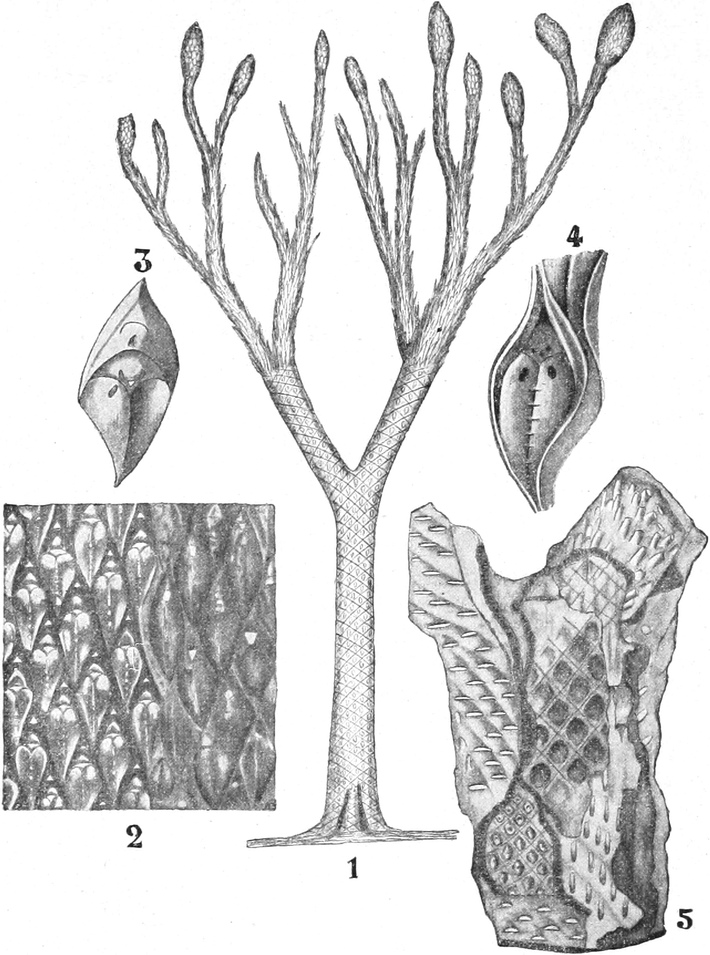
Fig. 505. 1 Lepidodendron, Rekonstruktion, entworfen von POTONIÉ. 2 L. aculeatum. Schaftstück, Hohldruck nach STERNBERG. 3 und 4 Lepidodendron, Blattpolster, nach POTONIÉ. 5 Rindenstück, nach SEWARD. Aus LOTSY, Botanische Stammesgeschichte.
Wie bei Selaginella bleibt auch hier das einfach gebaute weibliche Prothallium (Fig. 503) in der Makrospore eingeschlossen und ist nicht zu selbständigem Wachstum befähigt. In seiner Bildung zeigt es wie bei Selaginella Annäherung an die Koniferen, indem zunächst der Kern der Makrospore in zahlreiche, freie, wandständige Tochterkerne sich teilt, bevor die Zellwände, vom Scheitel der Spore zur Basis längs der Wandung fortschreitend, angelegt werden. Die ganze Spore wird so mit einem Prothallium gefüllt, an dessen Scheitel einige wenige Archegonien zur Entwicklung kommen. Der Embryo (Fig. 504) besitzt im Gegensatz zu den übrigen Lycopodinen keinen Embryoträger.
5. Ordnung. Sigillariaceae[450]. Die Siegelbäume sind vom Kulm ab nachgewiesen, waren im Karbon am artenreichsten und scheinen im Rotliegenden ausgestorben zu sein. Sie waren stattliche Gewächse mit mächtigen, in die Dicke wachsenden, säulenförmigen, einfachen oder nur wenig gegabelten Stämmen, oben mit langen pfriemlichen, einfachen, oberseits am Grunde mit Ligula versehenen Blättern besetzt und am Schafte bedeckt mit den Längszeilen sechseckiger Blattnarben, mit stammbürtigen, langgestielten, zapfenförmigen Blüten, deren Sporangien in Einzahl auf jedem Sporophyll gebildet wurden und heterospor waren.
6. Ordnung. Lepidodendraceae[450], [451]. Die Schuppenbäume, vom Oberdevon bis in das Rotliegende, besonders aber im Karbon verbreitet, waren ebenfalls baumartige bis etwa 30 m hohe Pflanzen, aber mit dichotom verzweigten, rhombisch gefelderten, in die Dicke wachsenden Stämmen, an denen oben die meist schraubig angeordneten, schmalen, bis 15 cm langen, mit Ligula versehenen Blätter auf rhombischen Blattkissen saßen (Fig. 505). Die zapfenförmigen Blüten (Lepidostrobus, Fig. 506) entsprangen endständig oder am Stamme selbst und enthielten Makro- und Mikrosporangien, je eins auf jedem Sporophyll. Die Zahl der Sporen im Makrosporangium war eine größere als bei Selaginella. In der Makrospore entwickelte sich ein Prothallium von ähnlichem Bau wie bei dieser Gattung.
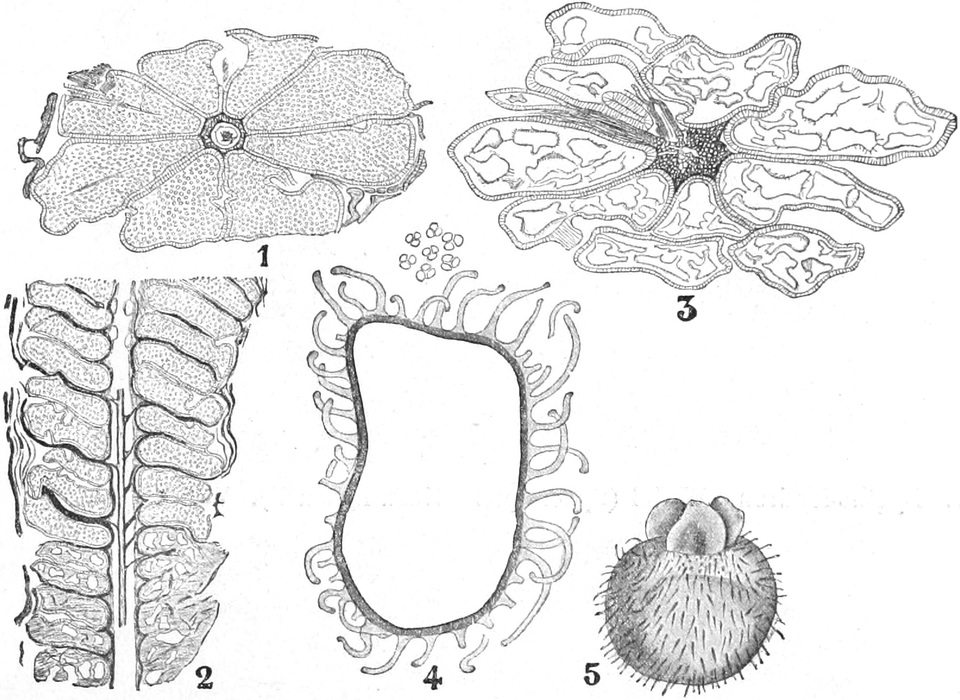
Fig. 506. Lepidostrobus Veltheimianus. 1 Mikrosporangien, Querschliff, rechts Tetraden von Mikrosporen. 2 Sporangienstand, Längsschliff, oben mit Mikro-, unten mit Makrosporangien. 3 Makrosporangien, Querschliff. 4 Makrospore im Längsschliff. 5 Makrospore, wahrscheinlich infolge der Keimung aufgesprungen. 1–5 nach SCOTT, KIDSTON, BINNEY. Aus LOTSY, Bot. Stammesgeschichte.
Von hohem Interesse ist die Auffindung samenähnlicher Gebilde bei einigen paläozoischen Lycopodinen (Lepidocarpon, Miadesmia), die daher auch als Lepidospermeae von den übrigen Ordnungen abgesondert werden können. Das Makrosporangium war bei ihnen bis auf eine enge Furche von einem Integument umhüllt und zum Teil auch von dem Sporophyll bedeckt. Nur eine einzige Makrospore kam in ihm zur Entwicklung; das Prothallium blieb wie bei Isoëtes in der Spore eingeschlossen. Die Mikrosporen wurden in Lepidostrobus-ähnlichen Blüten erzeugt. Wahrscheinlich gelangten die ausstäubenden Mikrosporen zu den Makrosporangien bereits auf der Mutterpflanze, von der sich später die Makrosporophylle samt ihren Sporangien loslösten.
Soweit unsere Kenntnisse reichen, stellen die Equisetinae und Sphenophyllinae Seitenzweige des Pteridophytenstammes dar, die keine Weiterentwicklung zu höheren Pflanzen erfuhren. Aus den Lycopodinen aber scheinen die Koniferen sich entwickelt zu haben, während aus den Filicinae bereits im Paläozoicum die ersten Samenpflanzen, die Pteridospermeae (Cycadofilices) hervorgegangen sind, die, auf einer höheren Stufe der Organisation als sämtliche übrigen Pteridophyten stehend, ein verbindendes Glied zwischen den Farnkräutern einerseits und den Cycadeen andererseits vorstellen. Sie sind bereits im Perm wieder ausgestorben.
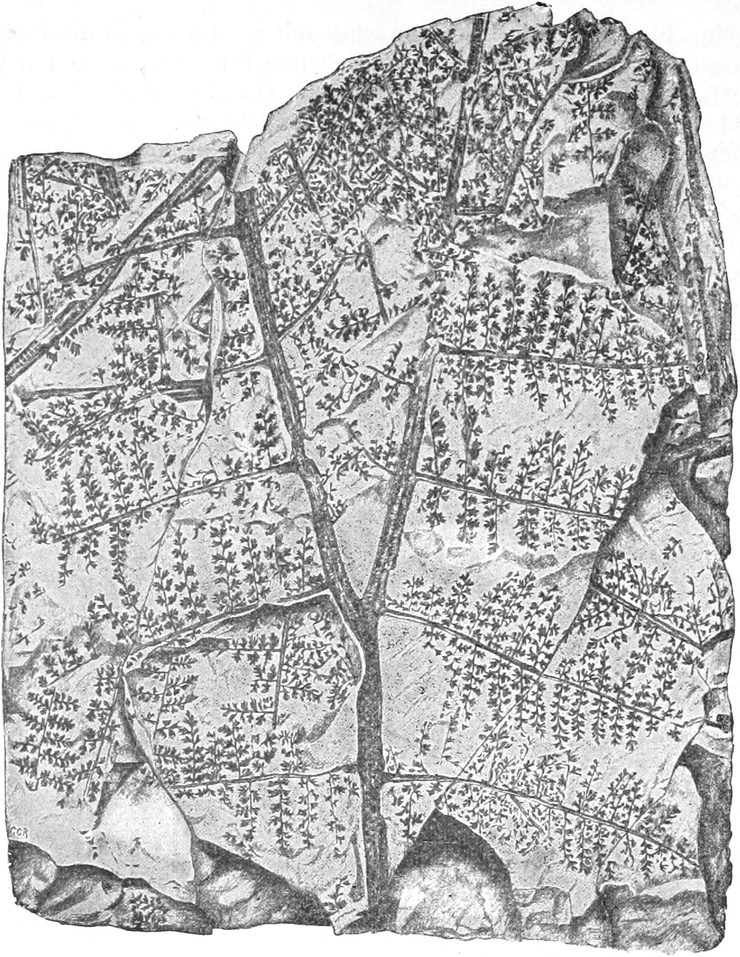
Fig. 507. Lyginodendron. Wedel (Sphenopteris Hoeninghausii). Verkl. 1⁄3. Nach POTONIÉ.
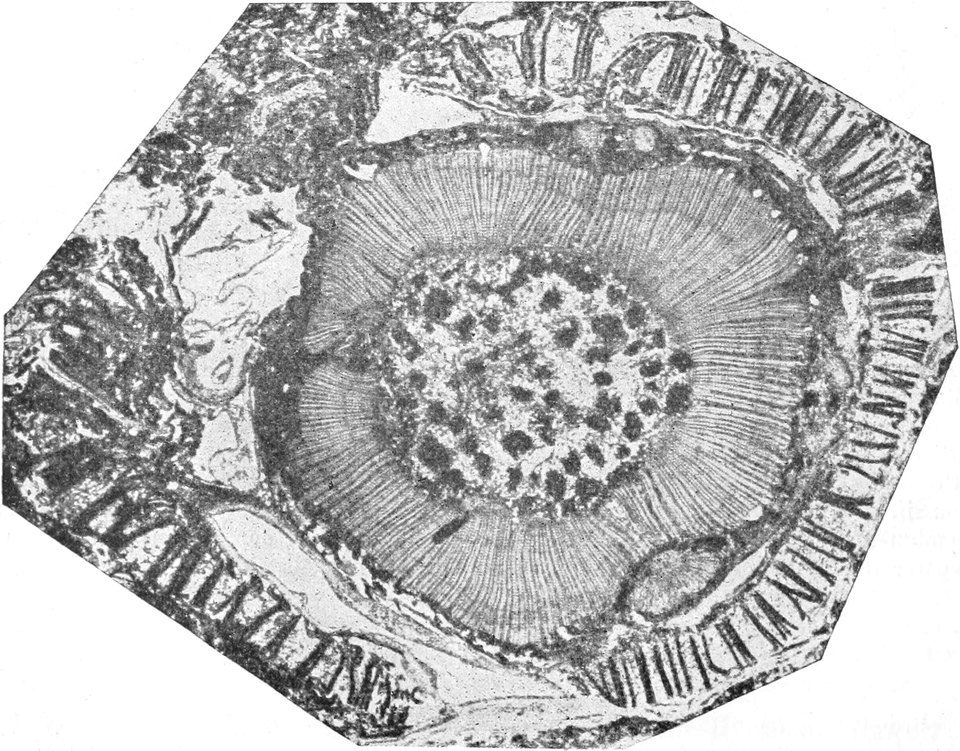
Fig. 508. Lyginodendron oldhamium. Stammquerschliff. Vergr. 21⁄2. Nach SCOTT.
In ihren stattlichen vegetativen Organen trugen sie den Charakter von eusporangiaten Farnen, im besonderen von Marattiaceen, zur Schau. Ihre Wedel (Sphenopteris Fig. 507, Neuropteris) waren reich gefiedert, der Blattstiel über der Basis gegabelt. Die axillär verzweigten Stämme (Lyginodendron) zeichneten sich durch sekundäres Dickenwachstum mittels eines Kambiums aus, das nach innen im Umkreis des großen zentralen Marks einen aus radial gereihten Elementen bestehenden Holzkörper, nach außen eine Phloëmzone abschied (Fig. 508). In der Rinde verliefen Blattspurbündel, die den Holzkörper durchsetzten und an die primären Gefäßstränge in der Markperipherie anschlossen. Auch die Wurzeln wurden sekundär verdickt.
Die Samenfarne waren heterospor. Ihre Sporangien entsprangen an Wedeln, die kaum von gewöhnlichen Farnwedeln verschieden waren. Mikrosporangien sind noch nicht bekannt; die als Crossotheca bezeichneten und hierher gerechneten Sporangien scheinen nicht zu Lyginodendron zu gehören. Die Makrosporangien (Lagenostoma, Fig. 509), bis zur Anheftungsstelle an der Basis frei, mit einem Integument versehen, waren von einer Cupula umhüllt und hatten ähnlichen Bau wie die Samenanlagen der Cycadeen; die Makrosporophylle waren aber noch nicht wie bei diesen zu zapfenartigen Blüten angeordnet.
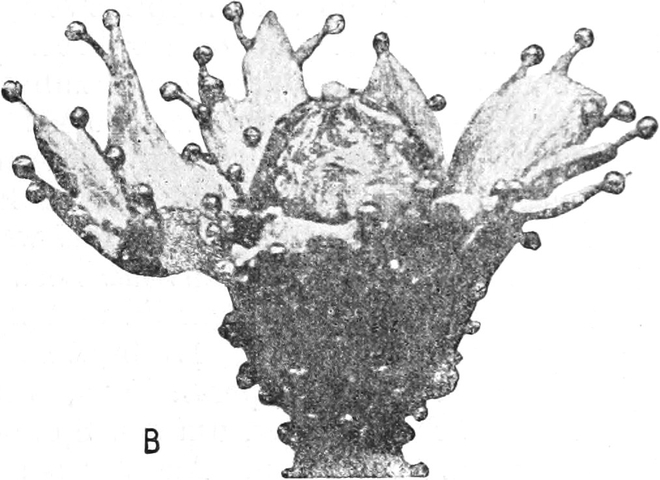
Fig. 509. Lyginodendron oldhamium. Makrosporangium (Lagenostoma). Die offene Cupula mit gestielten Drüsen besetzt, Rekonstruktion. Nach SCOTT.
Zweite Abteilung. Spermatophyta oder Samenpflanzen.
Übergang von den Farnpflanzen zu den Samenpflanzen[453]. Der scharf ausgeprägte Generationswechsel ist eines der wesentlichen Merkmale der Pteridophyten: Aus der Spore entsteht der selbständig lebende haploide Gametophyt, das meist nur kurzlebige Prothallium, aus dessen befruchteter Eizelle der ebenso selbständige diploide Sporophyt, das Farnkraut, der Schachtelhalm oder Bärlapp hervorgeht. Das Auftreten der Heterosporie führte zu weiterer Reduktion der Prothalliumpflanze, welche damit der Aufgabe, beiderlei Sexualorgane hervorzubringen, überhoben ward und nur verminderter Ausbildung bedurfte. So hatte das männliche Prothallium, in der Mikrospore entwickelt, nur noch Antheridien zu bilden, welche die Spermien lieferten; daneben blieb lediglich eine kleine funktionslose vegetative Zelle des Prothalliums erhalten. Auch das weibliche, in der Makrospore sich ausbildende Prothallium, bei Salvinia noch ergrünend und aus der Makrospore hervortretend, hat bei Selaginella und Isoëtes die Fähigkeit selbsttätiger Ernährung bereits verloren. Es beginnt seine Entwicklung schon innerhalb des mütterlichen Makrosporangiums, und die frei gewordenen Makrosporen öffnen sich schließlich nur, um den Spermien Zugang zu den scheitelständigen Archegonien zu gewähren. Aus der befruchteten Eizelle wächst ohne Ruhepause der Embryo zu dem jungen Sporophyten heran.
Von diesen am höchsten differenzierten Archegoniaten unterscheiden sich die einfachsten Samenpflanzen (Spermatophyten) nur unwesentlich.
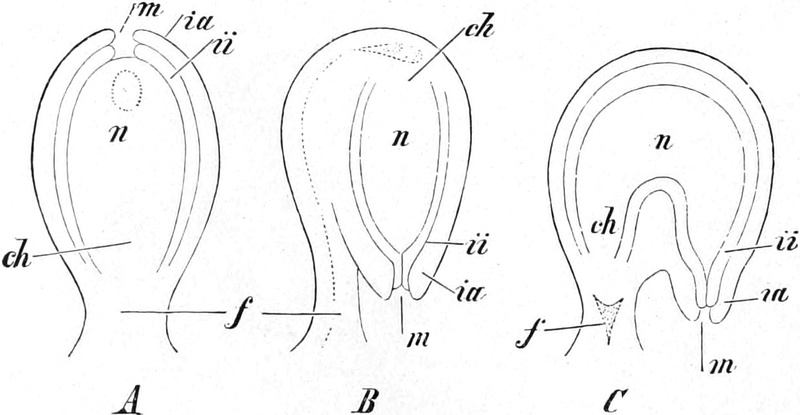
Fig. 510. A atrope, B anatrope, C kampylotrope Samenanlage. Schematisch und vergrößert. Modifiziert nach A. F. W. SCHIMPER. Erklärung im Text.
Die Makrospore, hier von altersher als Embryosack bezeichnet, bleibt stets im Makrosporangium, der Samenanlage (Fig. 510), eingeschlossen. Diese besteht aus dem Nucellus (n) und einer oder zwei von seinem Grunde, der Chalaza (ch), aus rings emporwachsenden Hüllen, den Integumenten (ii, ia), welche nur über dem Nucellusscheitel einen schmalen Zugang, die Mikropyle (m), freilassen. Mit einem oft sehr kurzen Stiele, dem Funiculus (f), ist ein solches Makrosporangium dem Sporophyll, hier Makrosporophyll oder Fruchtblatt genannt, angefügt. Die Ansatzstelle einer oder mehrerer Samenanlagen trägt den Namen Placenta. Ist der Nucellus die geradlinige Fortsetzung des Funiculus, so nennt man die Samenanlage gerade, atrop. Sehr viel häufiger erleidet der Funiculus unterhalb der Chalaza eine scharfe Krümmung, so daß die Samenanlage mit dem äußeren Integumente an ihm entlang zurückläuft; sie ist dann umgewendet, anatrop. Die in solchem Falle noch am reifen Samen kenntliche Verwachsungslinie von Funiculus und äußerem Integument heißt die Samennaht oder Raphe. Endlich kann der Nucellus selbst gekrümmt sein, man spricht dann von einer kampylotropen Samenanlage (Fig. 510 C).
Innerhalb einer solchen Samenanlage findet sich in der Regel nur ein einziger Embryosack vor. Wie im Makrosporangium (von Selaginella z. B.) durch Tetradenteilung vier Makrosporen entstehen, so werden auch in den Samenanlagen von der Embryosackmutterzelle vier Tochterzellen gebildet, von denen aber drei zugrunde gehen, während die vierte sich zur Makrospore, dem Embryosacke, entwickelt. Der Embryosack der einfachsten Samenpflanzen gleicht der Makrospore auch darin, daß er mit Prothalliumgewebe, hier Endosperm genannt, ausgefüllt ist, an dessen Scheitel ein oder mehrere Archegonien stehen, deren Eizelle besondere Größe besitzt. Die befruchtete Eizelle wächst zum Keim oder Embryo noch innerhalb der Makrospore und auf Kosten der Mutterpflanze heran. Erst nachdem der Embryo eine bei den verschiedenen Pflanzen verschieden hohe, aber für die betreffende Art charakteristische Stufe der Entwicklung erreicht hat, stellt er das Wachstum ein und geht nach Trennung von der Mutterpflanze einer Ruheperiode entgegen. Er ist von den entsprechend weiter entwickelten und in ihrer Ausbildung ihm angepaßten übrigen Teilen des Makrosporangiums umgeben, nämlich dem Prothallium oder Endosperm, dem Nucellus und der aus den Integumenten hervorgegangenen Schale. Das ganze aus der Samenanlage entstandene Gebilde wird Samen genannt. Diese Weiterentwicklung des geschlossenen Makrosporangiums zum Samen ist das charakteristische Merkmal der Samenpflanzen oder Spermatophyten.
Die Mikrosporen der Samenpflanzen heißen seit altersher Pollenkörner. Sie entstehen in großer Anzahl in den Mikrosporangien oder Pollensäcken, die einzeln oder in Mehrzahl von den Mikrosporophyllen, den Staubblättern (Stamina), erzeugt werden. Der die Pollensäcke führende Teil der Staubblätter heißt Anthere.
Die Bildung der Pollensäcke wird durch eine Teilung der auf die Epidermis folgenden Zellschicht der Anthere eingeleitet, die parallel zu der Oberfläche erfolgt und das primäre Archespor von den Schichtzellen trennt. Diese zerfallen in drei verschiedene Zellagen (Fig. 511), deren direkt unter der Epidermis liegende äußerste Lage bei den Angiospermen die Faserschicht gibt, die sich bei den Gymnospermen aus der Epidermis selbst bildet. Die mittlere Zellschicht geht später zugrunde, während die innerste die Tapetenschicht liefert, und das Archespor in weiteren Teilungen die Pollenmutterzellen gibt, deren jede, wie bei den Bryo- und Pteridophyten durch eine Tetradenteilung in vier Tochterzellen, die Pollenkörner, zerfällt. Diese sind kugelige bis ellipsoidische Körper; sie werden von einer Membran umhüllt, die eine äußere kutinisierte Exine und eine aus pektinreicher Zellulose bestehende Intine erkennen läßt.
Für die Beförderung der Pollenkörner zu den Samenanlagen wird bei den Samenpflanzen der Wind oder Beihilfe von Tieren in Anspruch genommen, während alle Farnpflanzen sich des Wassers als Transportmittel ihrer männlichen Sexualzellen bedienen. Die fortschreitende Rückbildung des männlichen Prothalliums, das schon bei den heterosporen Pteridophyten auf einzelne Zellen beschränkt war, führt bei den Samenpflanzen dahin, daß bei der Keimung des Pollenkornes, wenn von den bei vielen Gymnospermen noch gebildeten, sehr vergänglichen Prothalliumzellen (Fig. 512) abgesehen wird, nur noch zwei Zellen zu beobachten sind: eine vegetative und eine Antheridiumzelle. Die erstere wächst zu einem langen Schlauch, dem Pollenschlauche, aus, der durch chemotropische Reizbarkeit (vgl. S. 311) zu den Eizellen geleitet wird; letztere, die Antheridium-Mutterzelle, wandert in den Pollenschlauch ein und bildet dort früher oder später zwei generative oder Spermazellen, welche im Schlauche (daher die Bezeichnung Siphonogamen) vorwärtsgleitend in den Embryosack eindringen und zur Eizelle gelangen.
Das Ergebnis dieser Übersicht läßt sich also dahin zusammenfassen, daß die Samenpflanzen die Reihe der Pteridophyten fortsetzen und ihnen im Besitze eines Generationswechsels gleichen. (Vgl. Schema S. 467.[454]) Die immer reicher und mannigfaltiger werdende Gestaltung und Ausgliederung des Sporophyten ist aber von einer fortschreitenden Rückbildung des Gametophyten begleitet. Der Sporophyt hält die weibliche Geschlechtsgeneration während ihrer ganzen Entwicklung eingeschlossen; erst in und mit dem fertigen Samen, der den Beginn der nächsten ungeschlechtlichen Generation als Embryo in sich birgt, wird sie von dem Sporophyten getrennt.
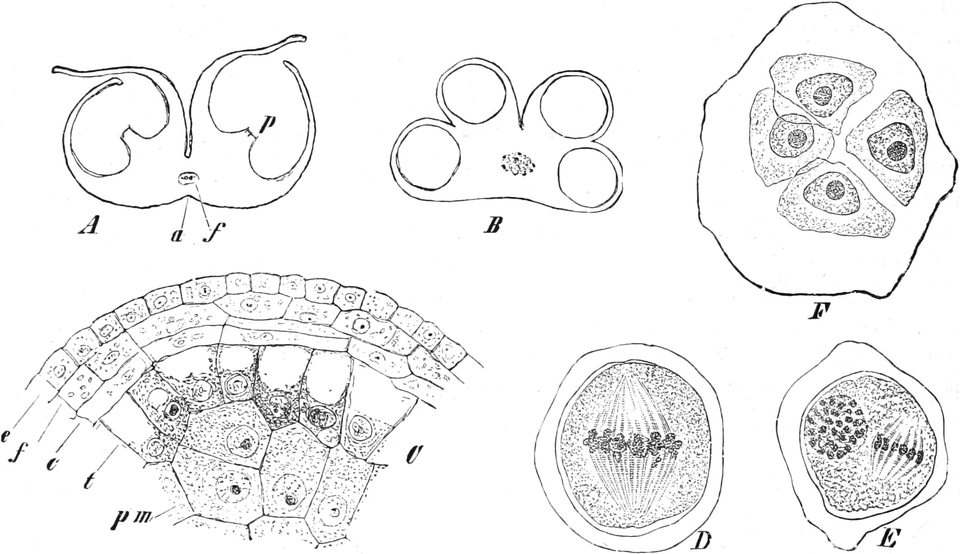
Fig. 511. Hemerocallis fulva. A Querschnitt durch eine fast reife Anthere, mit ihren durch den Schnitt geöffneten Fächern, p die Scheidewand zwischen den Fächern, a Furche am Konnektiv, f Leitbündel. Vergr. 14. B Querschnitt durch eine junge Anthere. Vergr. 28. C Teil des Querschnittes aus einem Fache, e Epidermis, f die spätere Faserschicht, c später verdrängte Wandschicht, t die sich später auflösende Tapetenschicht, pm Pollenmutterzellen. Vergr. 240. D, E Pollenmutterzelle von Alchimilla speciosa in Teilung begriffen. Vergr. 1125. F fertige Pollentetrade von Bryonia dioica. Vergr. 800. Nach E. STRASBURGER.
In voller Übereinstimmung mit dieser Darlegung des innerhalb der Samenpflanzen weiter zu verfolgenden Generationswechsels stehen die Ergebnisse der Untersuchungen über die Reduktionsteilung[455] der Sporenmutterzellen (vgl. S. 173). Die einer Pflanze zukommende Zahl von Chromosomen verringert sich bei den zur Bildung der Sexualgeneration führenden Teilungen auf die Hälfte, und erst der Befruchtungsakt stellt für den Embryo die volle Chromosomenzahl wieder her. So verfügt der Sporophyt stets über die diploide, der Gametophyt über die haploide Zahl der Kernfadensegmente.
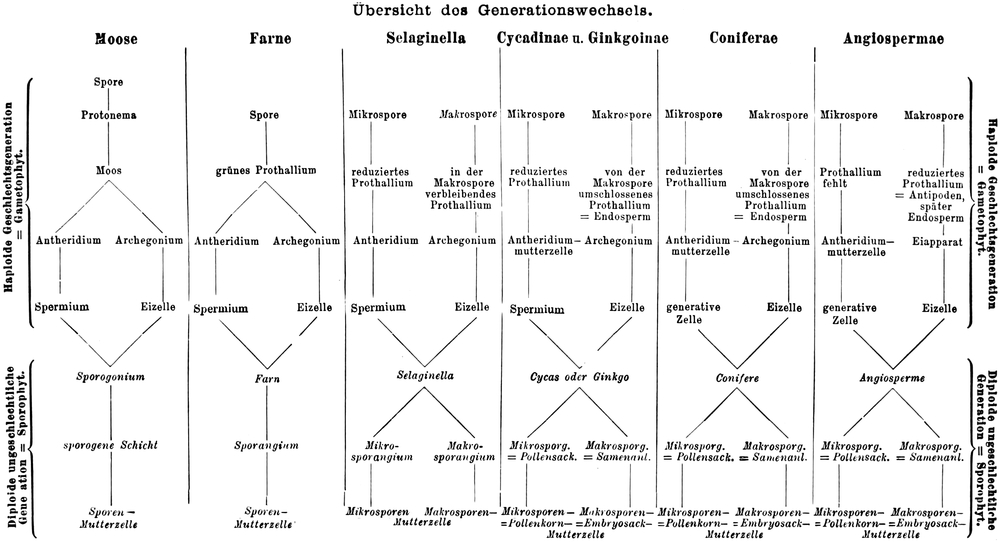
⇒ GRÖSSERES BILD
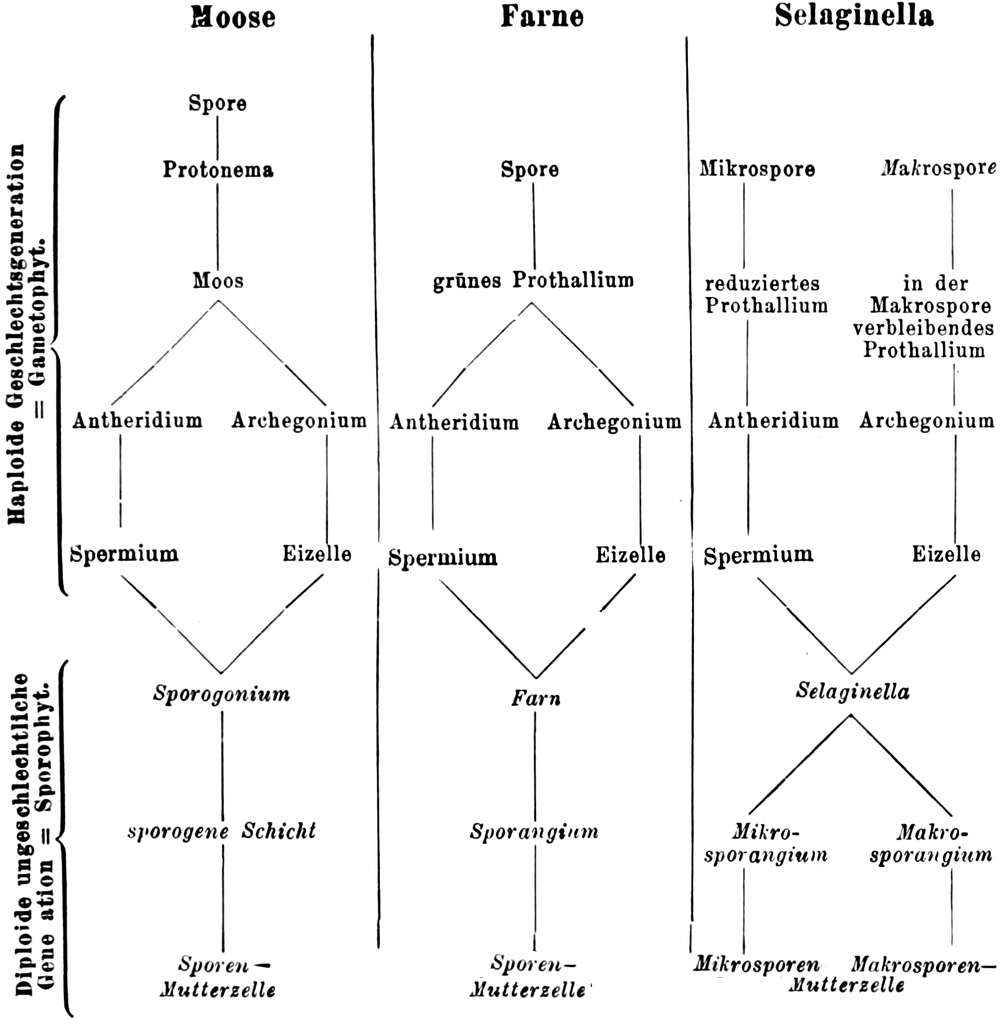
Generationswechsel; linker Teil des Schemas.
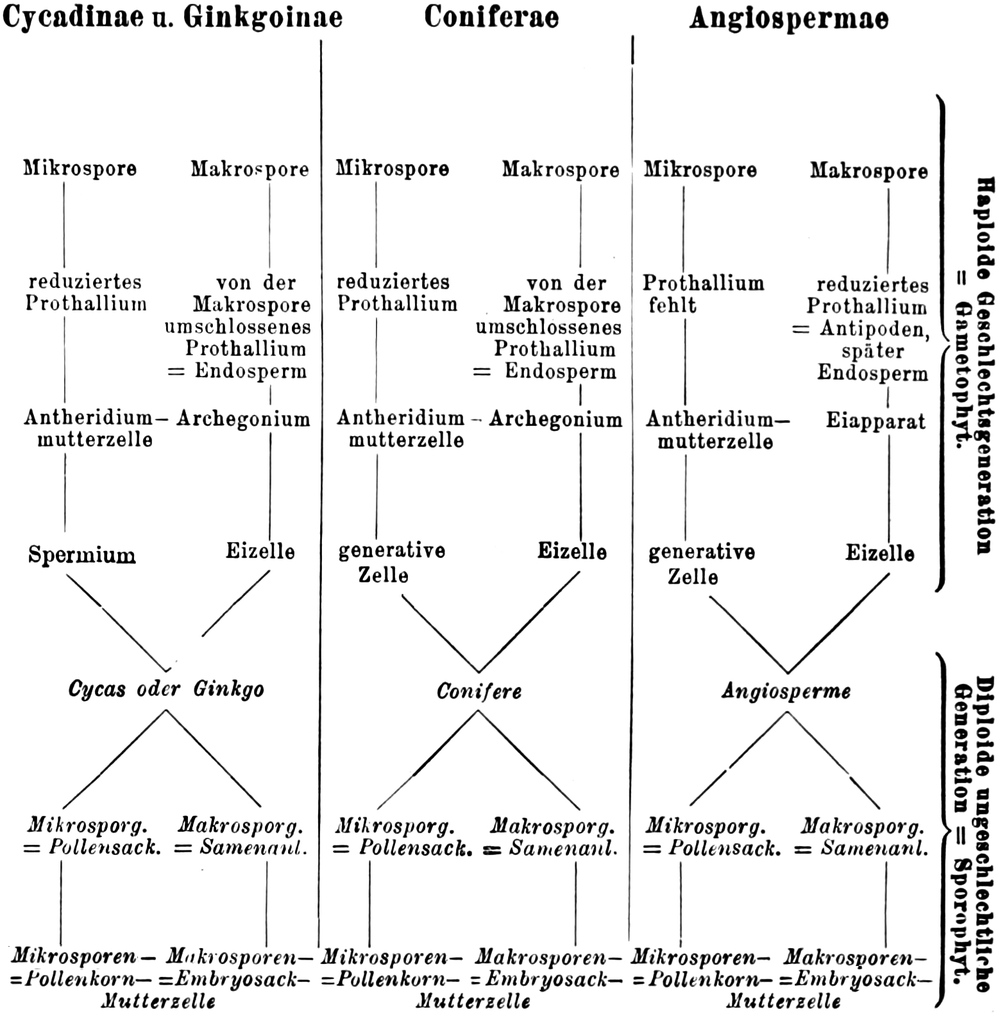
Generationswechsel; rechter Teil des Schemas.
Die Samenpflanzen zerfallen in zwei Klassen, die ihrem ganzen Aufbau nach erheblich verschieden sind: 1. die Gymnospermen oder nacktsamige Pflanzen, und 2. die Angiospermen oder bedecktsamige Pflanzen. Die Fruchtblätter der Angiospermen treten zur Bildung geschlossener Hohlräume, der Fruchtknoten, zusammen, in denen die Samenanlagen sich entwickeln; die Fruchtblätter der Gymnospermen bleiben offen, sie tragen die Samenanlagen frei auf ihrer Oberseite oder an ihren Rändern.
Die Gymnospermen sind die phylogenetisch älteren Pflanzenformen; sie sind einfacher gebaut und schließen im Verhalten ihrer Geschlechtsgeneration unmittelbar an heterospore Farnpflanzen an.
Die Angiospermen zeigen eine viel größere Mannigfaltigkeit im morphologischen wie anatomischen Aufbau. Ihre Entwicklung weicht von jener der Gymnospermen erheblich ab und läßt die Beziehung zu den Archegoniaten nicht mehr so deutlich erkennen.
Paläontologische Befunde zeigen uns dementsprechend Gymnospermenähnliche oder ihnen gleichende Formen neben Übergängen von den Farnpflanzen in den Gesteinsschichten des Devon, in der Steinkohlenformation und im Perm, während die Angiospermen erst viel später, in der Kreideformation, sicher nachweisbar werden.
Morphologie und Ökologie der Blüte[456].
1. Morphologie. Die Gymnospermenblüten sind stets eingeschlechtig, diklin, Mikro- und Makrosporophylle bleiben getrennt und bilden die männlichen oder die weiblichen Blüten. Beide Geschlechter finden sich entweder auf einem Individuum: die Pflanze ist einhäusig, monözisch, oder sie sind auf verschiedene verteilt: dann ist die Art zweihäusig, diözisch. Gymnospermenblüten haben außer den Sporophyllen, also den Staubblättern und den Fruchtblättern, nur bei den Gnetaceen andere, als Hülle dienende Blattgebilde aufzuweisen.
Die männlichen Blüten der Gymnospermen stellen Sprosse begrenzten Längenwachstums dar, deren Achse mit Sporophyllen in meist schraubiger Anordnung dicht besetzt ist. Ihre Knospenschuppen bleiben oft noch an der Basis der entfalteten Blüte erhalten (Fig. 512).
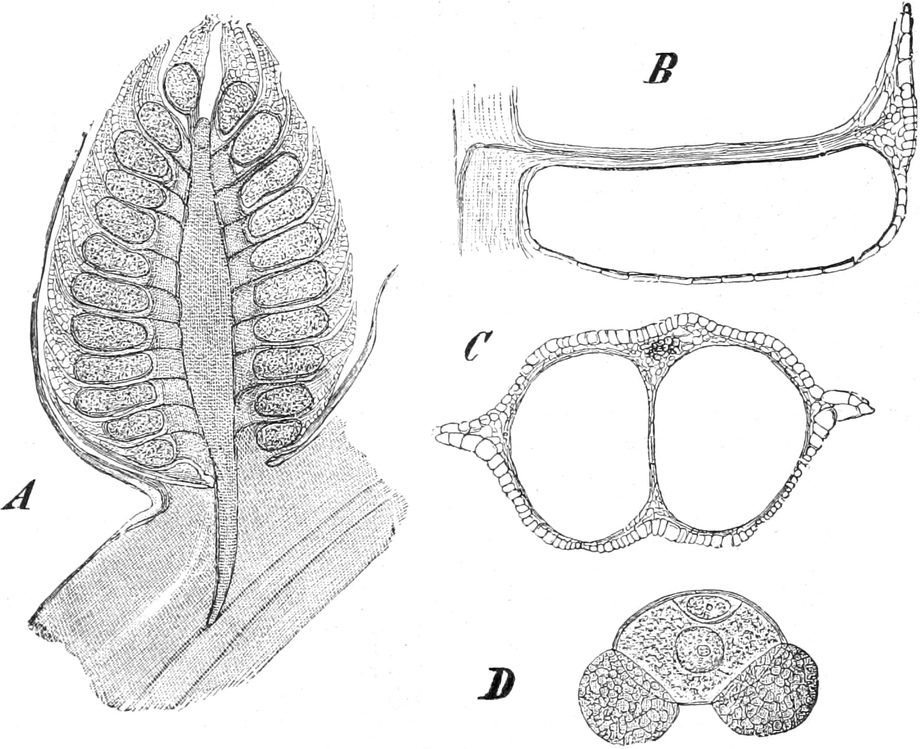
Fig. 512. Pinus montana. A Längsschnitt durch eine fast reife männliche Blüte. Vergr. 10. B Längsschnitt durch ein einzelnes Staubblatt. Vergr. 20. C Querschnitt durch ein Staubblatt. Vergr. 27. D Ein reifes Pollenkorn von Pinus silvestris. Vergr. 400. Nach E. STRASBURGER.
Die Mikrosporangien stehen in Zwei- oder Mehrzahl auf der Unterseite der Sporophylle. Ihre Öffnung wird, wie bei den Sporangien der Pteridophyten, durch eigenartige Ausbildung meist der äußersten, als „Exothecium“ bezeichneten Zellage der Wandung herbeigeführt. Die Pollenkörner sind rundlich, häufig mit zwei Luftsäcken versehen, welche die Verbreitung durch den Wind erleichtern (Fig. 512 A–D), Bei der Keimung entledigen sie sich ihrer äußeren derben Wandschicht, der Exine, vollständig; diese wird durch Dehnung des Plasmakörpers zum Platzen gebracht.
Die weiblichen Blüten sind bei zahlreichen Gymnospermen den männlichen ähnlich, insofern auch sie aus einer Achse und zahlreichen, in schraubiger Anordnung daran sitzenden Sporophyllen bestehen, also Zapfen darstellen. In anderen Fällen weichen sie aber erheblich von ihnen ab und sind überhaupt von einer weit größeren Mannigfaltigkeit; so kann über die Einzelheiten erst im speziellen Teil berichtet werden (S. 511 ff.).
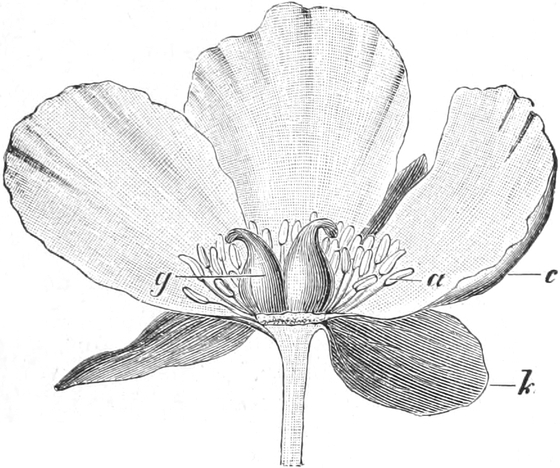
Fig. 513. Blüte von Paeonia peregrina. k Kelch, c Krone, zusammen das Perianth, a Andröceum, g Gynäceum, vorderer Teil der Blüte entfernt. 1⁄2 nat. Gr. Nach H. SCHENCK.
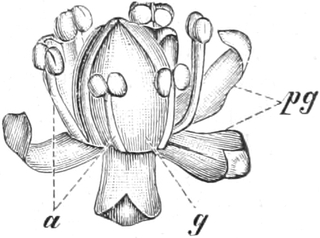
Fig. 514. Blüte von Acorus Calamus nach A. ENGLER. pg Perigon. a Andröceum, g Gynäceum. Vgr.
Die Angiospermen zeigen dagegen in der Regel die Vereinigung von Mikro- und Makrosporophyllen in einer Blüte, die danach zwittrig oder hermaphroditisch heißt. (Ausnahme z. B. Querciflorae.) Daneben sind in den Angiospermenblüten meist farbige, d. h. vom grünen Laubblatt verschiedene Hüllblätter, insgesamt Perianth genannt, vorhanden (Fig. 513, 514). (Ausnahme z. B. Querciflorae.) Der schraubigen Anordnung gymnospermer Sporophylle an den langgestreckten Achsen ihrer Blüten gegenüber fällt die meist wirtelige Stellung der Hüllblätter wie der Sporophylle um sehr verkürzte Achsen in den meisten angiospermen Blüten auf. (Ausnahme z. B. Polycarpicae.) Wirtelige Stellung der verschiedenen Blütenblätter, farbiges Perianth und Zwittrigkeit sind also charakteristisch für Angiospermenblüten, ohne aber allen Angiospermenblüten eigen zu sein. Der wichtige Faktor der Pollenübertragung ist für diese Verschiedenheiten verantwortlich zu machen. Wo der Wind diese Funktion übernommen hat, bietet die Streckung der Achse, die freie Stellung der weiblichen Empfängnisorgane nur Vorteile. Sind aber Tiere, Insekten oder Vögel, für die Bestäubung in Anspruch genommen, so ist Ausbildung des Perianths als eines weithin sichtbaren Schauapparates oder anderer Lockmittel notwendig, die etwa auf Formgefühl oder Geruchsinn wirken, und die Form der Blüte, Anordnung ihrer Sporophylle wie der Orte für Absonderung süß schmeckenden Nektars müssen sich den Körperformen oder den Gewohnheiten der betreffenden Tiere anbequemen. Diesem Umstande ist der unendliche Farben- und Formenreichtum angiospermer Blüten zum großen Teil zuzuschreiben.
Bei gewissen Angiospermen findet man hermaphrodite und eingeschlechtige Blüten an demselben Individuum, man nennt diese Erscheinung Polygamie; und zwar liegt Andro- oder Gynomonözie vor, je nachdem männliche oder weibliche Blüten neben Zwitterblüten vorkommen. Sind verschiedene Individuen einer Art teils mit Zwitterblüten, teils mit eingeschlechtigen Blüten versehen, so ist Andro- (bzw. Gyno-)diözie vorhanden.
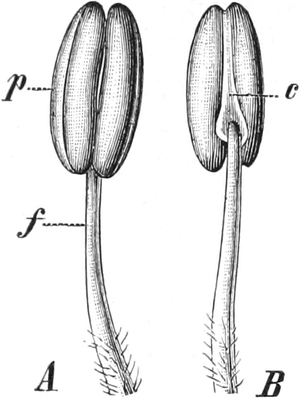
Fig. 515. Staubblätter von Hyoscyamus niger. A Von vorn, B von hinten. f Filament, c Konnektiv, p eine Theca. Vergr. Nach A. F. W. SCHIMPER.
Das Perianth angiospermer Blüten besteht aus meist zwei Wirteln, welche gleich geformt und gefärbt sein können (z. B. Lilium) und dann als Perigon bezeichnet werden, oder sie gliedern sich in einen äußeren grünen Kelchblattkreis und einen inneren gefärbten Kreis, die Krone oder Korolle (z. B. Rosa). Der äußere Wirtel umhüllt und schützt die Blütenknospe. In jeder vollzähligen Blüte folgen zwei Kreise von Mikrosporophyllen oder Staubblättern auf das Perianth, und ein Wirtel von Fruchtblättern, Makrosporophyllen, schließt die Blüte. Die Wirtel alternieren der Regel nach. Die gesamten Staubblätter pflegt man als Andröceum, die Fruchtblätter als Gynäceum zusammenzufassen.
Jedes Staubblatt besteht aus einem fadenförmigen Träger, dem Filament, und der Anthere, welche aus den beiden Thecae zusammengesetzt ist; sie werden durch das Konnektiv miteinander und dem Filament verbunden (Fig. 515). Jede Theca umfaßt ein Paar von Pollensäcken. Die Anthere kann ihre Thecae der Innenseite der Blüte, also dem Fruchtblattkreise, zuwenden oder sie nach außen kehren; sie heißt danach intrors oder extrors. Dem Öffnen einer reifen Theca dient meist (Ausnahme Ericaceae) die eigenartige Ausbildung der hypodermalen Faserschicht (Fig. 511 C f), „fibröse Schicht“ oder Endothecium genannt, während die Gymnospermen, bis auf Ginkgo (vgl. S. 511), gleich den Farnen ein „Exothecium“ besitzen. In der Regel wird die Scheidewand zwischen den beiden Pollensäcken beim Öffnen zerrissen, so daß sie dann nur ein Fach bilden (Fig. 511 A). Die Mikrosporen selbst sind in ihrer Ausrüstung verschieden; bei anemophilen Pflanzen auf die Verbreitung durch Wind angewiesen, sind sie glatt, trocken und leicht. Bei den von Tieren besuchten Blüten dagegen pflegen sie klebrig oder mit Stacheln und Vorragungen der Exine versehen zu sein, die ein besseres Haften am Haarkleid der bestäubenden Tiere ermöglichen. Sie unterscheiden sich von denen der Gymnospermen auch dadurch, daß bei ihrer Keimung die Exine nicht völlig abgeworfen zu werden braucht, weil sie von vornherein mit mehr oder weniger zahlreichen Durchtrittstellen für die Pollenschläuche ausgerüstet wird (Fig. 516). Sterile Staubblätter, welche keinen fruchtbaren Pollen hervorbringen, werden Staminodien (vgl. z. B. Scitamineen) genannt.
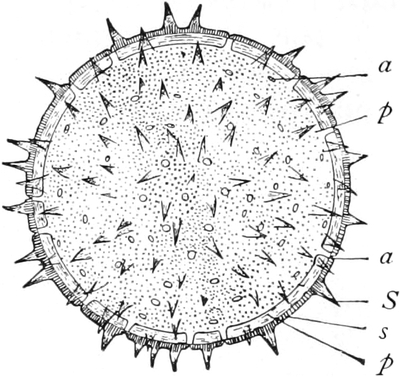
Fig. 516. Pollenkorn von Malva silvestris. S Stacheln der Exine, s Stäbchenschicht der Exine, a Austrittstellen der Pollenschläuche, p Stäbchen von oben. Nach A. MEYER.
Den Abschluß der Blüte bildet stets das Gynäceum. Seine Fruchtblätter, oder Karpelle, können frei bleiben und jedes für sich eine Frucht bilden (Fig. 517, 520 A), man spricht dann von einem apokarpen Fruchtknoten, oder sie verwachsen miteinander und stellen ein synkarpes Gynäceum (Fig. 518) dar. Die Fruchtblätter tragen ihre Samenanlagen meist am Rande auf mehr oder weniger deutlichen Wucherungen, den Placenten (Fig. 517 p). Apokarpe Fruchtknoten werden demnach an ihren beiden zusammenschließenden Rändern, an der sog. Bauchnaht, je eine Reihe von Samenanlagen führen; die ihr gegenüberstehende Rückennaht wird von der Mittelrippe des Blattes gebildet. In synkarpen Fruchtknoten treten die Samenanlagen ebenfalls meist an den Rändern der miteinander verwachsenen Fruchtblätter auf (Fig. 519 pl).
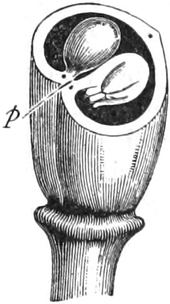
Fig. 517. Delphinium consolida. Querschnitt durch den Fruchtknoten mit Samenanlagen an der Plazenta p. Nach ENGLER-PRANTL.
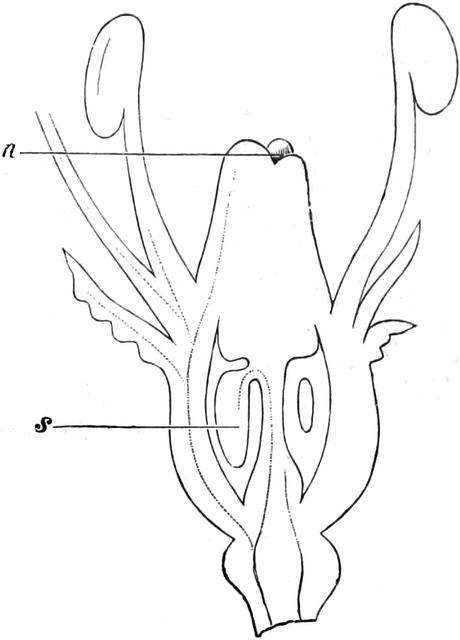
Fig. 518. Sambucus nigra. Blütenlängsschnitt. s Samenanlage, n Narbe. Nach TSCHIRCH-ÖSTERLE.
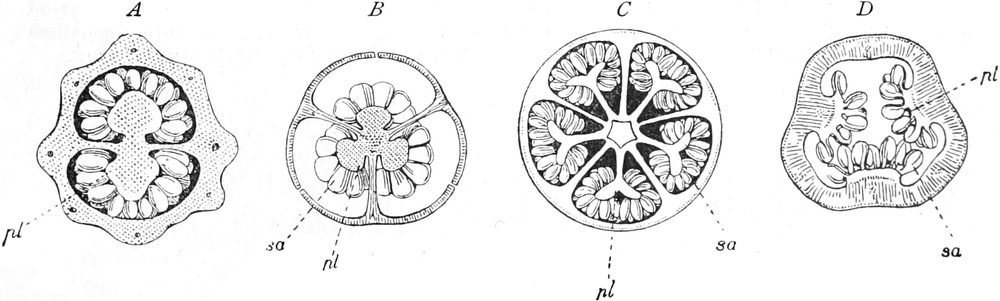
Fig. 519. Querschnitt von Fruchtknoten. A Lobelia. B Diapensia. C Rhododendron. D Passiflora. pl Plazenta, sa Samenanlagen. Nach LE MAOUT et DECAISNE.
Die Samen werden parietal genannt, wenn die Placenten der Wandinnenseite als flache Wülste entspringen (Fig. 519 D). Tritt durch weiteres Eindringen der Karpellränder eine Fächerung des Fruchtknotens ein, so rücken die Placenten und ihre Samenanlagen gleichfalls nach innen vor; sie werden zentralwinkelständig, wie Fig. 519 B zeigt. Nur die aus den Karpellrändern selbst gebildeten Scheidewände pflegt man als echte zu bezeichnen gegenüber den z. B. bei den Cruciferen vorhandenen falschen (Fig. 701), die aus Wucherungen der Fruchtblätter oder ihrer Nähte hervorgehen. Durch Beteiligung der Blütenachse, welche im Zentrum zwischen den Fruchtblättern emporwächst und sich von dem Karpellgewebe nicht scharf trennen läßt, kommt eine sog. Zentralplacenta zustande (z. B. Primulaceen). Die ursprünglich vorhandenen Scheidewände bleiben schon in früherem Alter im Wachstum zurück oder werden aufgelöst, so daß die mit dem Karpellgewebe emporgehobenen Samenanlagen an einer zentralen, von den Fruchtblättern überkleideten Achse sitzen, während die Außenteile der Fruchtblätter sie als einheitliche Wand umgeben.
Jedes einzelne Fruchtblatt im apokarpen Gynäceum setzt sich nach oben in einen stielartigen Griffel (Stylus) fort und endet in einer sehr verschieden gestalteten Narbe (Stigma), die als Empfängnisapparat dient und dementsprechend papillös, feucht und klebrig zu sein pflegt (Fig. 520 D). In einem völlig synkarpen Fruchtknoten ist nur ein einheitlicher Griffel und eine Narbe vorhanden. Fig. 520 stellt ein apokarpes Gynäceum (A), ein synkarpes (C) und einen nur im unteren Teil verwachsenen Fruchtknoten mit freien Griffeln (B) dar.
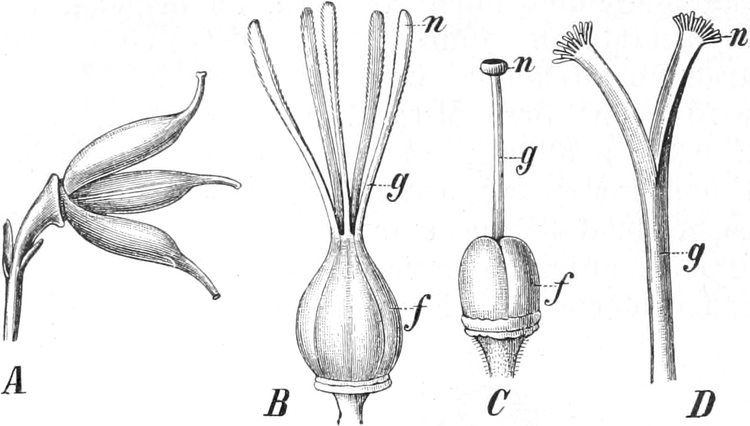
Fig. 520. Verschiedene Formen des Gynäceums. A Von Aconitum Napellus. B Von Linum usitatissimum. C Von Nicotiana rustica. D Griffel und Narbe von Achillea millefolium. f Fruchtknoten, g Griffel, n Narbe. Vergr. Nach BERG und SCHMIDT.
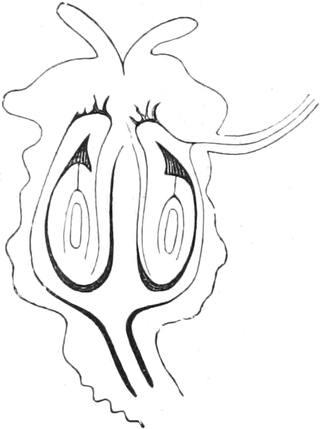
Fig. 521. Fruchtknoten von Conium maculatum mit hängenden Samenanlagen im Längsschnitte. Raphe ventral. Nach TSCHIRCH-ÖSTERLE.
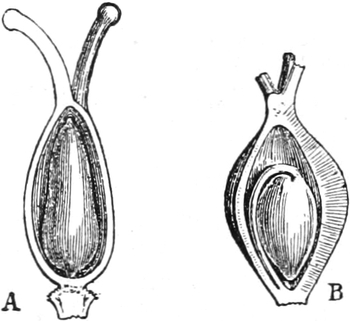
Fig. 522. Fruchtknoten mit aufrechter Samenanlage, im Längsschnitte. A Von Fagopyrum esculentum (atrop). B Von Armeria maritima (anatrop). Vergr. 20. Nach DUCHARTRE.
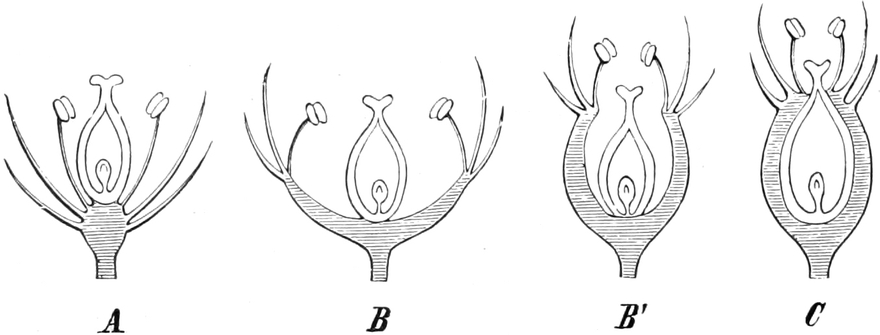
Fig. 523. A Oberständiger Fruchtknoten (hypogyne Blüte). B, B′ Mittelständiger Fruchtknoten (perigyne Blüten). C Unterständiger Fruchtknoten (epigyne Blüte). Nach A. F. W. SCHIMPER.
Die Lage der Samenanlagen im Fruchtknoten kann aufrecht, hängend, wagerecht oder schräg zur Achse sein (Fig. 521, 522). Bei anatropen Samenanlagen ist die Raphe ventral gelegen, wenn sie der Bauchseite des Fruchtblattes zugekehrt ist, dorsal, wenn sie gegen die Rückenseite sieht.
Eine große Mannigfaltigkeit der Blütenformen wird ferner durch verschiedene Gestaltung der Blütenachse und entsprechend geänderte Lage des Gynäceums bedingt. Die schematischen Figuren (Fig. 523 A–C) geben einige der häufigeren Fälle wieder. Eine Verdickung des Achsenendes gegenüber dem Tragstiele ist meist vorhanden, häufig eine Verbreiterung und Vorwölbung oder Aushöhlung und Vertiefung. Stehen an einfach kegelförmiger Achse die alternierenden Quirle der Blüte übereinander, so ist das Gynäceum als Abschluß der oberste Kreis, es ist oberständig, die übrige Blüte selbst wird also unterständig oder hypogyn (Fig. 524 1). Wird aber durch starke Verbreiterung des Achsenendes zu einem flachen Blütenboden, Receptaculum (Hypanthium), oder zu einem ausgehöhlten Blütenbecher (Fig. 523 B, B1), ein breiter Rand zwischen Andröceum und Gynäceum eingeschoben, so spricht man von einer perigynen Blüte, einem mittelständigen Fruchtknoten (Fig. 524 2). Schließt sich endlich die ausgehöhlte Blütenachse mit ihren Kelch, Krone und Andröceum tragenden Rändern oben wieder zusammen, so daß die Fruchtblätter mit ihr verwachsen, so ist das Gynäceum unterständig, die Blüte oberständig oder epigyn (Fig. 524 3). Der Deutlichkeit halber soll im folgenden stets die Bezeichnung von der Stellung des Gynäceums hergeleitet werden, also nur vom oberständigen, mittelständigen oder unterständigen Fruchtknoten die Rede sein.
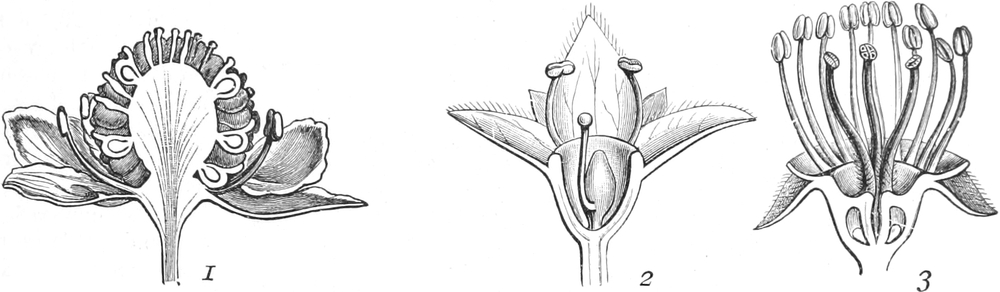
Fig. 524. Blütenlängsschnitte. 1 Ranunculus sceleratus mit zahlreichen oberständigen apokarpen Fruchtblättern auf kegelförmiger Blütenachse (hypogyne Blüte). Vergr. (Nach H. BAILLON). 2 Alchimilla alpina, mittelständiger Fruchtknoten (perigyne Blüte). 3 Pirus malus, unterständiger Fruchtknoten (epigyne Blüte). Vergr. Nach W. O. FOCKE.
Ökologisch wichtige Gebilde der Blüte sind endlich die Nektarien, bestimmte Stellen der Achse oder anderer Blütenteile, die zuckerreiche Flüssigkeit (Nektar, Honig) zur Anlockung der bestäubenden Tiere ausscheiden.
Eine typische Angiospermenblüte führt ihre Organe also in fünf miteinander alternierenden Wirteln, von denen zwei auf das Perianth, zwei auf das Andröceum, einer auf das Gynäceum entfallen. Sie ist fünfwirtelig, pentazyklisch. Die Zahl der Glieder ist entweder für alle Wirtel dieselbe, so z. B. für eine regelmäßige Monokotylenblüte drei, eine Dikotylenblüte fünf, oder es tritt besonders innerhalb der zum Andröceum und Gynäceum gehörenden Wirtel eine Vermehrung oder Verminderung der Zahl ein. Auch kann z. B. im Andröceum ein Wirtel ganz ausfallen oder die Wirtelzahl vermehrt werden. Blüten mit nur einem Andröceumwirtel heißen haplostemon, solche mit zwei Wirteln diplostemon. Steht der äußere Andröceumwirtel (und dementsprechend derjenige der Fruchtblätter) nicht alternierend mit dem Kronblattwirtel, sondern direkt vor ihm, so ist das Andröceum obdiplostemon.
Das Diagramm (S. 77) einer fünfwirteligen Monokotylenblüte, derart orientiert, daß der Querschnitt der Infloreszenzachse oben, derjenige des Deckblattes (vgl. S. 106) sich unten befindet, ergibt Fig. 525, dasjenige einer ebensolchen Blüte dikotyler Art Fig. 526.
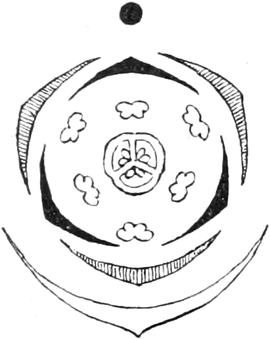
Fig. 525. Diagramm einer pentazyklischen Monokotylenblüte (Lilium).
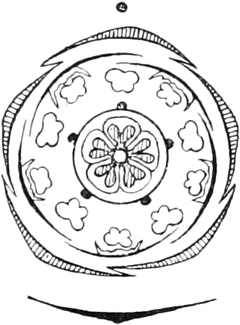
Fig. 526. Diagramm einer pentazyklischen Dikotylenblüte (Viscaria).
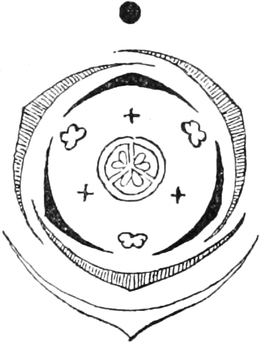
Fig. 527. Theoretisches Diagramm einer Irisblüte. Der fehlende Staubblattquirl ist durch Kreuze bezeichnet.
Nach A. W. EICHLER.
Beide Diagramme sind sog. empirische Diagramme. Von einem theoretischen Diagramm spricht man dagegen, wenn nicht nur die tatsächlich vorhandenen Organe eingetragen werden, sondern auch solche, deren früheres Vorhandensein man aus phylogenetischen Gründen annehmen muß; so ist z. B. bei den mit den Liliaceen nahe verwandten Iridaceen nur einer, und zwar der äußere Staubblattwirtel vorhanden, der innere, dessen Gegenwart der Verwandtschaft nach zu erwarten wäre, ist ausgefallen. Somit erhalten wir, wenn die Stellung der fehlenden Glieder mit Kreuzen in das empirische Diagramm eingetragen wird, das beistehende theoretische Diagramm der Iridaceen (Fig. 527). Gelegentlich kommen derartige dem theoretischen Diagramm entsprechende „vollständige“ Irisblüten vor, und es ist HEINRICHER[454] gelungen, eine solche Blütenform durch Generationen hindurch aus Samen weiter zu ziehen. Ein derartiges auf Merkmale der Vorfahren weisendes Rückschlagen wird als „Atavismus“ bezeichnet (vgl. S. 178).
Zu einem kurzen Ausdruck eines solchen Diagramms bedient man sich der sog. Blütenformeln, d. h. man setzt für jeden Wirtel ein Buchstabenzeichen, etwa Kelch = K, Corolle = C, oder aber Perigon = P, Andröceum = A, Gynäceum = G und die Zahl der Glieder im Wirtel dahinter. Bei starker Vermehrung der Glieder kann das Zeichen ∞ gesetzt werden. Verwachsung der Glieder eines Wirtels wird durch eine Klammer um die betreffende Zahl, die Stellung des Fruchtknotens durch einen unter (oberständig) oder über (unterständig) der Zahl angebrachten Strich angedeutet. Die Blütendiagramme (Fig. 525, 526) wären also zu schreiben: P3 + 3, A3 + 3, G (3) für Monokotylen und K5, C5, A5 + 5, G(5) für Dikotylenblüten, für eine Ranunkel K5, C5, A ∞, G ∞, für den Schierling: K5, C5, A5, G (2), für Artemisia endlich: KO, C (5), A (5), G (2).
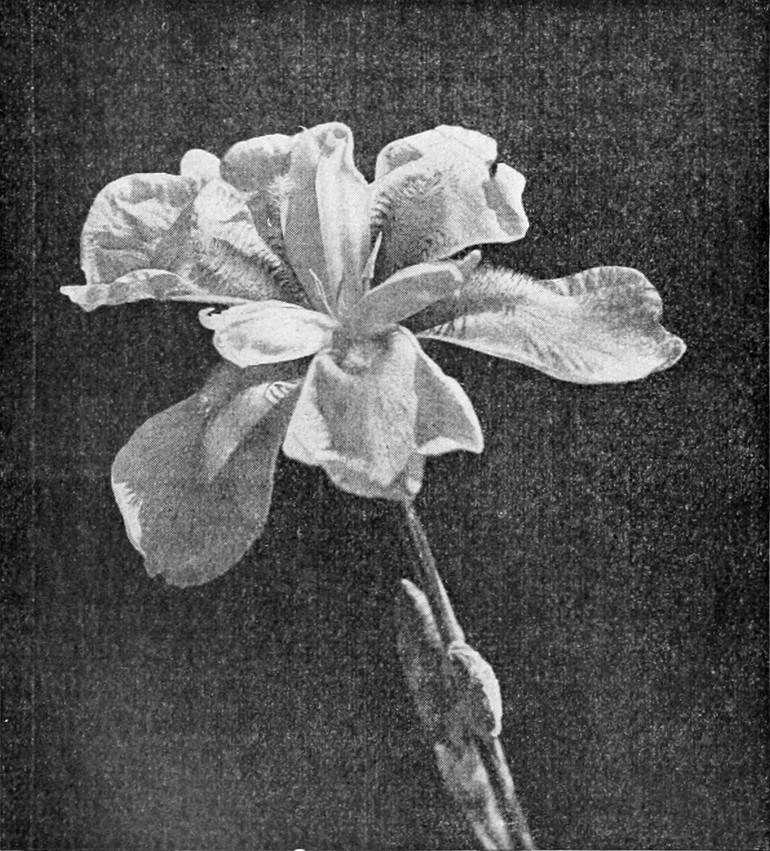
Fig. 528. Atavistische Form von Iris pallida Lam. abavia. Nach E. HEINRICHER.
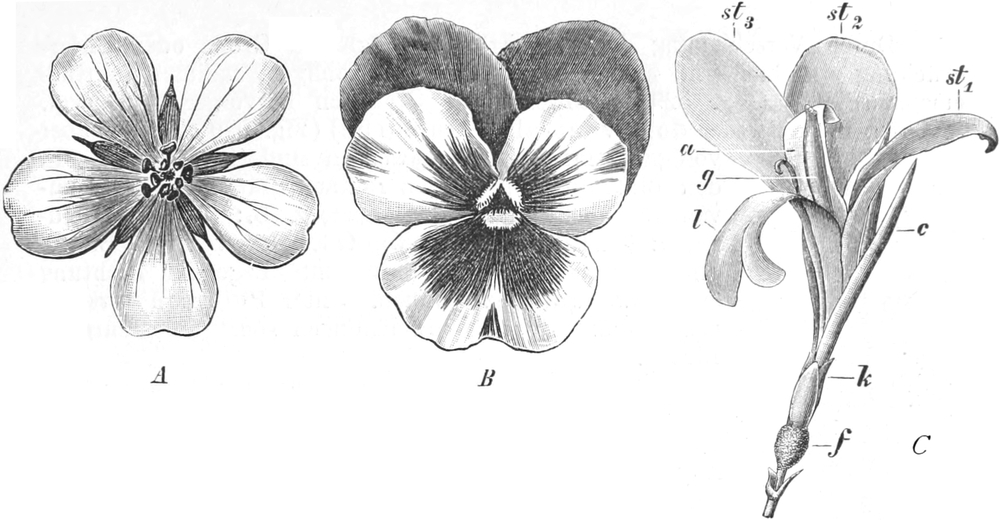
Fig. 529. A Radiäre (aktinomorphe) Blüte von Geranium sanguineum. B Dorsiventrale (zygomorphe) Blüte von Viola tricolor. Nach A. F. W. SCHIMPER. C Asymmetrische Blüte von Canna iridiflora. f Fruchtknoten, k Kelch, c Krone, l Labellum, st 1–3 die übrigen Staminodien, a fertile Anthere, g Griffel. 1⁄4, nat. Gr. Nach H. SCHENCK.
Fig. 530. Schemata razemöser Blütenstände. A Traube. B Ähre. C Dolde. D Köpfchen. E Rispe. F Zusammengesetzte Dolde oder Doppeldolde.
Fig. 531. Blütenähre von Plantago lanceolata. Nach DUCHARTRE.
Fig. 532. Blütenkätzchen von Corylus americana. Nach DUCHARTRE.
Durch Verschiebung der Blütenglieder, ungleiche Größe oder Unterdrückung einzelner sind aus dem ursprünglich strahligen, radiären (aktinomorphen) Bau (Fig. 529 A) abweichende Gestalten hervorgegangen (vgl. S. 65 f.), die entweder dorsiventral (zygomorph) (Fig. 529 B), oder aber völlig asymmetrisch geworden sind (Fig. 529 C). In den Blütenformeln werden radiäre Blüten mit , dorsiventrale mit ↓ gekennzeichnet, z. B.: für den Goldregen ↓ K(5), C5 A(5 + 5), G1. Dorsiventrale Blüten pflegen immer eine ganz bestimmte Lage zur Richtung der Schwerkraft anzunehmen. Unter Pelorien versteht man radiäre Bildungsabweichungen sonst dorsiventraler Bluten.
Blütenstände (Infloreszenzen).
Die im vorstehenden beschriebenen Blüten der Angiospermen stehen in verhältnismäßig seltenen Fällen einzeln, viel häufiger sind sie zu mehreren oder vielen auf Verzweigungssysteme verteilt, die man als Blütenstände oder Infloreszenzen bezeichnet. Von den vegetativen Verzweigungen unterscheiden sich die Blütenstände durch die gedrängte, dichte Stellung ihrer Seitenzweige, durch die meist schuppenförmige Ausbildung der Deckblätter oder Brakteen und der Vorblätter, in deren Achseln die Seitenzweige oder Einzelblüten stehen, und durch das Austreiben aller Achselknospen, wenigstens in vielen Fällen. In den Infloreszenzen der Cruciferen fehlen die Hochblätter vollkommen.
Fig. 533. Traube von Linaria striata. Blüten mit Deckblättern d. Nach A. F. W. SCHIMPER.
Fig. 534. Doldiger Blütenstand der Kirsche. Nach DUCHARTRE.
Fig. 535. Blütenrispe von Yucca filamentosa. Verkl. Nach A. F. W. SCHIMPER.
A. Die Hauptachse wächst stärker als die Seitensprosse.
I. Die Blütenstände können, wie die vegetativen Verzweigungen, Monopodien (vgl. S. 110) sein, so daß die Hauptachse dem Wachstum ihrer Seitenzweige stets überlegen bleibt (oder die Seitensprosse wachsen ebenso stark); solche razemösen Blütenstände treten in verschiedenen Formen auf (Schemata Fig. 530):
α) Seitenachsen unverzweigt.
1. Traube, gestielte Einzelblüten an der verlängerten Hauptachse, Schema 530 A. Fig. 533.
2. Ähre, sitzende Einzelblüten an der verlängerten Hauptachse, Schema 530 B. Fig. 531.
Ist die Achse fleischig verdickt, so heißt die Ähre Kolben wie bei den Araceen. Fällt die Ähre nach dem Verblühen (der Fruchtreife) als Ganzes ab, so heißt sie Kätzchen Fig. 532.
β) Seitenachsen verzweigt.
3. Rispe, eine verlängerte Hauptachse, deren Seitenachsen Trauben sind. Schema 530 E. Fig. 535.
B. Die Haupt- und Seitenachsen wachsen gleich stark.
4. Dolde, eine Anzahl von Seitenachsen, die alle gleichmäßig mit der in eine Einzelblüte ausgehenden Hauptachse wachsen. Schema 530 C. Fig. 534.
5. Zusammengesetzte Dolde, eine Dolde, die an Stelle der Einzelblüten wiederum Dolden trägt. Schema 530 F. Fig. 666.
6. Köpfchen, sitzende Einzelblüten an einer verkürzten und oben verbreiterten Hauptachse. Schema 530 D (Compositae). Fig. 799.
II. Oder die jeweilige Hauptachse wird jedesmal von ihren Seitenachsen überholt; dann liegen zymöse Blütenstände vor, die sich nach Zahl und Stellung der Seitensprosse in Pleiochasium, Dichasium und Monochasium unterscheiden. Diese Verzweigungen sind S. 111 bereits ausführlich beschrieben und im Grundriß dargestellt (Fig. 152). Auch sind dort die monochasialen Verzweigungssysteme, Sichel und Fächel, wie die aus dem Dichasium ableitbaren Schraubel und Wickel behandelt, so daß hier nur auf die Abbildung eines typischen Dichasiums (Fig. 536) und diejenige des Wickels (Fig. 537) hingewiesen zu werden braucht.
Fig. 536. Zymöser Blütenstand (Dichasium) von Cerastium collinum. t–t⁗ die aufeinanderfolgenden Achsen. Nach DUCHARTRE.
Fig. 537. Blütenwickel von Heliotropium curassavicum. Nach ENGLER-PRANTL.
2. Ökologie. Die Blütenbestäubung[457] (vgl. S. 170). Viele sonst rätselhaft bleibende Unterschiede im Bau der Blüten und in der Anordnung ihrer Organe werden verständlich, wenn man sie ökologisch betrachtet. Gemeinsam ist es allen Blüten, Nachkommenschaft auf sexuelle Weise hervorzubringen; die Wege, die zu diesem Ergebnisse führen, sind aber sehr verschieden. Gegenüber den Bryophyten und Pteridophyten, bei welchen die Vereinigung der Geschlechtszellen unter Zuhilfenahme des Wassers sich vollzieht, sind die Samenpflanzen, die keine freibeweglichen männlichen Geschlechtszellen entlassen, und deren Eizellen dauernd im Gewebe der Mutterpflanze eingeschlossen bleiben, gezwungen, andere Wege einzuschlagen. Eine besondere Art der Zuführung der Pollenkörner zu den von ihren Makrosporangien umschlossenen Makrosporen und der darin befindlichen Eizelle wird notwendig. Es müssen die zum Empfange des Pollens bereiten Narben (oder Mikropylen) bestäubt werden.
Eine sehr große Zahl von Samenpflanzen bedient sich der bewegten Luft, des Windes, als Übermittler des Pollens, wie z. B. unsere gesamten Koniferen und auch die Mehrzahl der einheimischen Laubbäume: die Ulme, Eiche, Buche, Hainbuche, ferner unsere Gräser, besonders die Getreidearten. So einfach die Verhältnisse in diesem Falle zu liegen scheinen, so bedarf es doch mancherlei notwendiger Voraussetzungen für einen sicheren Erfolg dieser Übertragungsart.
Vor allem müssen solche windblütigen oder anemophilen Pflanzen eine ungeheuere Masse von Pollen erzeugen, da naturgemäß nur ein geringer Bruchteil den Ort seiner Bestimmung erreichen kann. So sieht man wohl zur Zeit, da unsere Nadelwälder in Blüte stehen, ungezählte Mengen des in die Luft entführten Pollenstaubes bei eintretendem Regenwetter als dichten gelben „Schwefelregen“ niederfallen.
Fig. 538. Alnus glutinosa. 1 Blühender Zweig mit kleinen aufrechten weiblichen und hängenden männlichen Kätzchen und Blatt. 2 Eine Deckschuppe mit männlichen Blüten. 3 Weibliches Kätzchen. 4 2 weibliche Blüten mit Deckschuppe. 5 Fruchtstand. 6 Frucht. 3⁄4 nat. Gr., 2–6 vergr.
Die anemophilen Pflanzen und Blüten haben nun einige Charakterzüge gemein, die in Beziehung zu der Windbestäubung stehen und keineswegs als bloße Zufälligkeiten gelten können. Das gilt in erster Linie für den Bau der männlichen Blütenstände. Sie haben oft die Form mehr oder minder lang herabhängender Kätzchen (Fig. 538) angenommen, die eine große Zahl von Mikrosporophyllen vereinigen und so orientiert sind, daß der Wind nach Öffnung der Sporangien alle Sporen ausfegen oder ausschütteln kann; z. B. Eichen (Fig. 690), Birken (Fig. 683), Erlen (Fig. 538), Haselnuß, Hainbuchen (Fig. 684), die auffallend langen Walnußkätzchen (Fig. 679), dasselbe gilt für die aufrechten Koniferenblüten(Fig. 604). Gleiche Bedeutung kommt der Befestigung der Gramineen-Antheren auf langen schwanken Filamenten zu (Fig. 539). Einige Urticaceen (Pilea-Arten, Brennesseln usw.) schleudern ihren Pollen bei Öffnung der Fächer mit Hilfe der elastisch gespannten Filamente als leichte Staubwölkchen in die Luft. Wie die Infloreszenzen und Blüten, so haben auch die Pollenkörner der Anemophilen charakteristische Merkmale. Sie sind leicht und glatt, bei einigen Nadelhölzern sogar mit zwei lufthaltigen Flugblasen (Fig. 512 D) versehen, die ein längeres Schweben in der Luft ermöglichen.
Die weiblichen Blüten pflegen der lebhaften Farben zu entbehren und besitzen keine Nektarien. Ihre Narben, die den Pollen auffangen, sind jedoch besonders mächtig entwickelt und mit langen Federhaaren versehen (Fig. 539) oder pinselförmig, federförmig oder lang fadenförmig ausgezogen. Bei vielen Gymnospermen, besonders deutlich bei Taxus, scheidet die Mikropyle des Makrosporangium zur Blütezeit einen Flüssigkeitstropfen aus, an dem die Pollenkörner hängen bleiben und beim Eintrocknen des Tropfens auf den Scheitel des Nucellus niedergesogen werden; in anderen Fällen gleiten die Pollenkörner zwischen den auseinander gespreizten Sporophyllschuppen der zapfenförmigen, aufgerichteten Blüten hinab, bis sie am Grunde zwischen die Integumentfortsätze gelangen und an den feuchten Mikropylenöffnungen haften.
Endlich ist aber auch der Zeitpunkt des Blühens nicht bedeutungslos. Die Ulme blüht lange vor ihrer Belaubung bereits im Februar oder März, die Haselnuß, Pappel und Erle (Fig. 538) machen es ebenso, und bei Walnuß, Eiche, Hainbuche und Birke, ja auch bei der Rotbuche sieht man die Blüten mit den ersten Blättern hervorbrechen und ihre Blütezeit vollenden, bevor die Belaubung voll entwickelt ist. Es würde im anderen Falle eine ungeheuere Menge von Pollenkörnern an der Behaarung und in den Falten der großen Laubblätter hängen bleiben und damit noch mehr Blütenstaub, als so schon der Fall ist, seiner eigentlichen Bestimmung entzogen werden. Bei den Nadelhölzern ist die Blattform viel weniger hinderlich, und außerdem sehen wir bei ihnen die weiblichen Blütenzapfen in den Spitzen ihrer Kronen (Abies) oder am Gipfel der Baumpyramiden (Picea) hervorsprossen, während die männlichen Blüten sich mehr an den unteren Zweigen entwickeln. Der bei trockenem, warmem Wetter entleerte Pollen wird von der bei Sonnenschein sich erwärmenden und an den Bäumen entlang aufsteigenden Luft mit emporgeführt und erreicht so die hoch über seiner Bildungsstätte stehenden weiblichen Zapfen mit ihren zahlreichen Samenanlagen.
Sehr gering ist die Zahl derjenigen Samenpflanzen, bei denen das Wasser eine Rolle bei der Pollenübertragung zu spielen hat; es handelt sich ausschließlich um submerse Wasserpflanzen, die sich ihrem Medium nicht entziehen können und als wasserblütige oder hydrophile Gewächse neben die anemophilen treten (z. B. Zostera, das Seegras Vallisneria spiralis und Helodea, die Wasserpest).
Fig. 539. Anemophile Blüte von Festuca elatior. Nach H. SCHENCK.
Für die große Mehrzahl der Samenpflanzen jedoch kommen weder Wind noch Wasser, sondern Tiere, und zwar in erster Linie Insekten als Pollenüberträger in Betracht. Auf Insekten zur Pollenübertragung angewiesene Pflanzen heißen entomophil.
Seit KONRAD SPRENGEL in seiner berühmten Schrift „Das entdeckte Geheimnis der Natur im Bau und in der Befruchtung der Blumen 1793“ die Wechselbeziehungen zwischen den die Blumen besuchenden Insekten und den Formen und Farben der Blumen aufgedeckt hatte, ist kein anderes Gebiet der Biologie so eifrig durchforscht worden wie die Blütenökologie, die man schon begann mit dem Begriff der Pflanzenbiologie überhaupt zu verwechseln. Um so merkwürdiger ist es, daß sich niemand die Frage vorgelegt hatte, ob denn die unserem Auge sich darbietenden Farben auch von den Insekten in gleicher Art wahrgenommen werden könnten? Freilich erschien es schwer, sich das Auftreten der ganzen Farbenpracht unserer Wiesen und Obstbäume anders zu denken, denn als „Schauapparat“ für die Nahrung suchende Insektenwelt, deren Hunger zu befriedigen die Blumen eigene Vorkehrungen in ihren Nektarien besitzen, obwohl ja auch nicht entomophile Blüten, wie diejenigen unserer Koniferen, die Narben von Corylus u. a., intensive Farben entwickeln.
Es ist das Verdienst von C. HESS[458], dieser Frage nachgegangen zu sein. Auf Grund seines Nachweises, daß die Bienen, die wichtigsten Blütenbestäuber, in einem Merkmal mit farbenblinden Menschen übereinstimmen, darf man eine Rot-Grün-Farbenblindheit bei Bienen im allgemeinen annehmen, während HESS für völlige Farbenblindheit eintrat.
Durch eine Reihe sorgfältiger, experimenteller Arbeiten hat V. FRISCH[459] diese Meinung zu entkräften gewußt und höchst interessante innigere Beziehungen zwischen Bienen und Blütenbesuch festgestellt. Er unterscheidet bei den Blütenbesuchen der Bienen zwischen „Suchern“ und „Sammlern“. Die Sucher finden neue ergiebige Nektarquellen mittels der Farben (es wurde mit gelb und blau experimentiert) aus beträchtlicher Entfernung auf und erkennen in der Nähe an dem Blütendufte mit großer Genauigkeit die für sie geeigneten Blüten heraus. Sie übermitteln ihre Befunde den Stockgenossen mittels einer charakteristischen Zeichensprache und kehren mit einem oder mehr Sammlern zu der Fundstelle zurück, die nun stetig weiter ausgebeutet wird.
Unzweifelhaft bleibt also die Wechselwirkung zwischen Blumen und Insekten bezüglich des Farben-, Geruch- und Formensinns bestehen. Wenn eine Fernwirkung des Duftes für Bienen im allgemeinen nicht nachzuweisen war, so scheinen Falter, Sphingiden und Eulen darin abzuweichen. Denn welche Vorstellung sollte man sich von dem starken, gegen Abend sich steigernden Duft von Lonicera, Philadelphus usw. machen, wenn nicht die eines Anlockungsmittels für Nachtfalter, die dem Dufte entgegenfliegen und damit ihre Nahrungsquelle zu finden vermögen? Wie wollte man sich die Nektarien und die Ausgabe von großen Mengen eines so wichtigen Pflanzenreservestoffes wie Zucker erklären, wenn die Gäste, die ihn gierig aufsuchen, den Blüten nicht unentbehrlich wären? Wie endlich kann man den Blütenbau einer Salvia, einer Orchis, ja irgendeiner dorsiventral gebauten Blüte verstehen wollen, wenn man ihn nicht in Beziehung bringt zu den sie aufsuchenden, ihren Nektar saugenden und sie dabei bestäubenden Insekten? Die wechselseitigen Anpassungen der Blütenformen und der Insektenkörper sind so zahlreich, und die Erfahrung, daß sonst wohlgedeihende Pflanzen fern ihrer Heimat aus Mangel an den ihnen angepaßten Blütenbestäubern unfruchtbar bleiben — wie es z. B. bei der Vanille der Fall war, bis man die Blüten durch Menschenhand bestäubte —, nachgerade so häufig gemacht worden, daß man an dem Angepaßtsein von Blüten an bestimmte Insekten und umgekehrt nicht zweifeln kann.
Meist ist die Lage der vom Insekt aufgesuchten Nektarien derart, daß das Haarkleid der Tiere an ganz bestimmten Stellen Pollenkörner mitnehmen muß, die beim Besuche anderer Blüten auf die Narbe übertragen werden. Da ist es denn wichtig, daß solche entomophilen Pflanzen ihre Pollenkörner ganz anders ausrüsten als die vorher betrachteten anemophilen. Viele stachlichte Hervorragungen, rauhe oder klebrige Oberflächen oder das Zusammenbleiben in Tetraden, ja in ganzen Pollenfächern wie bei Orchis (Fig. 842) und Asclepias sind für den Pollen entomophiler Pflanzen charakteristisch. Daß solcher Pollen neben dem Nektar für manche Insekten ein besonders wertvolles, weil stickstoffhaltiges Nahrungsmittel bildet, wie für die Bienen, die ihn zum „Bienenbrot“ verkneten, ist ebenfalls von Bedeutung.
Fig. 540. Blütenbestäubung bei Salvia pratensis. (Erklärung im Text.) Nach F. NOLL.
Ein sehr inniges Zusammenwirken von Blütenbau und Insektenkörper bietet die Bestäubung von Salvia pratensis durch Hummeln. Fig. 540 1 zeigt eine Salviablüte mit einer Nektar suchenden Hummel auf der Unterlippe. Salvia hat nur zwei Staubblätter, deren Antherenhälften ganz verschieden entwickelt sind: die eine ist steril und bildet eine Verschlußklappe in der Blumenkronröhre (Fig. 540 4), die andere sitzt am Ende eines langgestreckten Konnektivs, das diese fertile Hälfte unter die Wölbung der Oberlippe hinaufhebt. So ist ein ungleichseitiger Hebel gebildet, der drehbar an der Filamentspitze befestigt ist. Bei Einführung des Rüssels übt die Hummel einen Druck auf den kürzeren Arm, die fertile Antherenhälfte wird damit durch die Hebelwirkung des Konnektivs (c) um den Ansatzpunkt am Filament (f) gedreht und fest auf dem Haarkleid des Hummelhinterleibes abgestreift (Fig. 540 1, 3). Beim Besuche einer älteren Blüte findet sie den Griffel weiter unter der Oberlippe hervorgewachsen (vgl. S. 483 Dichogamie) und seine Narbe genau an der Stelle jener Antherenhälfte, so daß von dort mitgenommene Pollenkörner auf dem sichersten Wege der Narbe übermittelt werden müssen.
Jedoch nicht die Nahrung allein zieht die Insekten zu den Blüten hin, auch der Fortpflanzungsinstinkt führt sie in einigen Fällen zum Blütenbesuch. Das mißfarbige Aussehen und der Aasgeruch mancher Araceen, Asclepiadaceen- und Aristolochiaceenblüten veranlassen Aasfliegen zum Besuch der Blüten, in denen sie ihre Eier ablegen und gleichzeitig Pollen anderer vorher besuchter Blüten übertragen. Die Bestäubung der Feigenblüten (Fig. 541) wird durch eine Gallwespe besorgt, welche in die krugförmigen Blütenstände einkriecht, ihre Eier in die kurzgriffeligen Gallblüten ablegt und dabei den vom „Caprificus“, den männlichen Blütenpflanzen, mitgebrachten Pollen den langgriffeligen weiblichen Samenblüten zuführt (Fig. 541). Yucca filamentosa endlich ist für ihre Fortpflanzung gänzlich auf eine Motte (Pronuba) angewiesen, welche ihre Eier in die Yucca-Fruchtknoten ablegt und die Narbe gleichzeitig bestäubt. Wenn auch die Raupen einen großen Teil der Samenanlagen fressen, so bleiben doch stets Samen übrig, während ohne Bestäubungsvermittler, wie die bei uns kultivierten Exemplare zeigen, überhaupt kein Samenansatz erfolgen kann.
Fig. 541. Ficus carica. A Längsschnitt durch einen Blütenstand. B Samenblüte. C Gallenblüte. D Männliche Blüte. B–D vergr. D nach KERNER. B, C nach H. Graf SOLMS-LAUBACH.
Neben der Entomophilie spielt die auf amerikanische Kolibris und die Honigvögel der alten Welt sich beziehend Ornithophilie eine weit bescheidenere Rolle. Einen besonders merkwürdigen Fall von Anpassung zwischen einer Blüte und ihrem Bestäuber stellt die in unseren Gewächshäusern häufig kultivierte Strelitzia reginae dar (Fig. 542). Ihre drei äußeren Perigonblätter (t) sind lebhaft orangerot gefärbt; das große azurblaue Labellum (p) entspricht einem der inneren Perigonblätter, während die beiden übrigen (p) unscheinbar bleiben und den Zugang zum Nektarium überdachen, das reichlich Nektar austräufeln läßt. Staubblätter (st) und Griffel (g) liegen in einer das Labellum der Länge nach durchziehenden Rinne, deren Ränder leicht auseinanderklappen; die Narbe (g) ragt frei über das Labellum hinaus. Der in den gleichen Farben prangende Vogel, Nectarinia afra, fliegt zuerst die Narbe an und streift nachher, auf dem Labellum weiter vordringend, den Pollen der Staubblätter ab, den er auf eine nächste Narbe übertragen kann. Ebenso eigenartig ist der Bau der hängenden Marcgravia-Infloreszenzen mit Deckblättern, die zu Nektar haltenden Kannen umgewandelt sind; doch steht dieser nach neueren Beobachtungen nicht mit der Entomophilie in Beziehung[460]. Durch die angeführten Untersuchungen von HESS (S. 480) wird es erklärlich, daß die meisten ornithophilen Blüten intensiv rot gefärbt sind (Aloë, Clianthus, epiphytische Loranthaceen usw.), da die Empfindlichkeit für Rot beim Tagvogel jener für unser Auge ähnlich ist.
Fig. 542. Ornithophile Blüte von Strelitzia reginae und Querschnitt durch das große Labellum p. t Äußere, p innere Perigonblätter, g Griffel bzw. Narbe, st Staubblätter. Aus A. F. W. SCHIMPER, Pflanzengeographie.
Der Vollständigkeit halber seien auch noch die chiropterophilen Blüten erwähnt, z. B. diejenigen der Pandanacee Freycinetia, deren innere Deckblätter den großen Fledermäusen des Malayischen Archipels, den bekannten „fliegenden Hunden“, ein beliebter Leckerbissen sind, wofür sie sich durch die Pollenübermittelung dieser diözischen Pflanze nützlich erweisen. Endlich sollen Calla palustris, Chrysosplenium und Aspidistra durch Schnecken bestäubt werden, sie wären demnach als malakophile Pflanzen zu bezeichnen.
Da die Mehrzahl angiospermer Pflanzen hermaphrodite Blüten besitzt, könnte es merkwürdig erscheinen, daß so mannigfache und verwickelte Anpassungen der Übertragung des Pollens auf andere Blüten, also der Kreuzung dienen müssen. Zunächst aber liefert oft die Bestäubung mit eigenem Pollen, die Selbstbestäubung oder Autogamie, minder guten Samenansatz, z. B. bei dem Roggen, oder bleibt ganz ohne Erfolg. Derartige „selbststerile“ Pflanzen sind z. B. Lobelia fulgens, Corydalis cava, Cardamine pratensis. Ebenso wird Fremdbestäubung, Allogamie, eintreten müssen, wenn der Pollen nur nach Verwundung der Narbe zu keimen vermag, wie bei Laburnum vulgare; hier erfüllt nur Insektenbesuch, der in der Regel fremden Pollen mitbringen dürfte, die Keimungsbedingung und schließt damit blüteneigenen Pollen aus. Bei Orchideen aber wirkt der eigene Pollen vielfach direkt schädigend und läßt die damit belegte Blüte alsbald absterben.
Fig. 543. Blüte von Anthriscus silvestris. Schwach vergr. 1 im männlichen, 2 im weiblichen Stadium. Nach H. MÜLLER.
Aber auch wo keine Selbststerilität besteht, gibt es zahlreiche und sehr mannigfaltige Einrichtungen, die eine Selbstbestäubung hermaphroditer Blüten völlig unmöglich machen und Fremdbestäubung begünstigen. Daß Diözie die Selbstbestäubung ausschließt, daß monözische Blütenverteilung wenigstens die Bestäubung mit blüteneigenem Pollen verhindern muß, bedarf ja keiner Erörterung. Ein gleiches Verhältnis wird dort vorliegen, wo die beiden Geschlechter einer hermaphroditen Blüte ungleichzeitig reifen. Dieser sehr häufige Fall wird als Dichogamie bezeichnet. Naturgemäß sind bei dichogamen Pflanzen zwei verschiedene Möglichkeiten vorhanden; entweder reifen die Staubblätter zuerst, und der Pollen wird entleert, bevor die Narben derselben Blüte belegungsfähig sind, die Pflanze ist protandrisch, oder umgekehrt der Griffel mit seinen Narben ist reif, bevor der Pollen verbreitet werden kann, die Pflanze ist protogyn.
Fig. 544. Blütenstand von Plantago media mit protogynen Blüten. Aus den mittleren noch geschlossenen Blüten ragt der bestäubungsfähige Griffel hervor (). Die unteren Blüten haben den Griffel bereits verloren, dafür aber die langen Staubblätter entfaltet (). Nach F. NOLL.
Die Protandrie ist der weitaus häufigere Fall der Dichogamie. So sind bei den Blüten der Kompositen, Campanulaceen, Lobeliaceen, Umbelliferen (Fig. 543), Geraniaceen, Malvaceen (Fig. 709) u. a. die Narben noch unentwickelt, wenn die Staubblätter ihre Pollenmassen entlassen. Auch bei Salvia (Fig. 540) ist Protandrie notwendige Voraussetzung der Fremdbestäubung. Bei der Protogynie dagegen wird die Bestäubung nur von seiten älterer Blüten möglich sein, deren Pollen nach Abblühen des Griffels und seiner Narben freigeworden ist. Hierher gehören die Plantaginaceen (Fig. 544), Scrophularia nodosa, Aristolochia Clematitis, Arum maculatum, Helleborus, Magnolia.
In gleichem Sinne wirkt die von DARWIN zuerst aufgedeckte Heterostylie, die freilich TISCHLER zufolge durch Ernährungseinflüsse verändert werden kann. Halten wir uns an das abgebildete Beispiel (Fig. 545) von Primula sinensis, so zeigt sich beim Vergleich von Blüten verschiedener Individuen, daß sie sich in der Länge ihrer Staubblätter und Narben unterscheiden. Man findet „langgriffelige“ Blüten, deren Narben den Eingang der Kronröhre verengern, deren Antheren dagegen tief unten in der Röhre sitzen; ein anderes „kurzgriffeliges“ Individuum zeigt die Antheren in Höhe der Narbe jener erstbetrachteten Blüte, die Narbe in Höhe ihrer Antheren. Ein und dasselbe Insekt kann natürlich nur gleich hochstehende Blütenorgane mit derselben Körperstelle berühren, also nur die sich ihrer Lage nach entsprechenden Blütenteile bestäuben, so daß Fremdbestäubung gesichert ist. Die Betrachtung der Pollenkörner und der Narbenpapillen läßt leicht erkennen, daß ihre Größenverhältnisse wechselseitige Bestäubung bedingen.
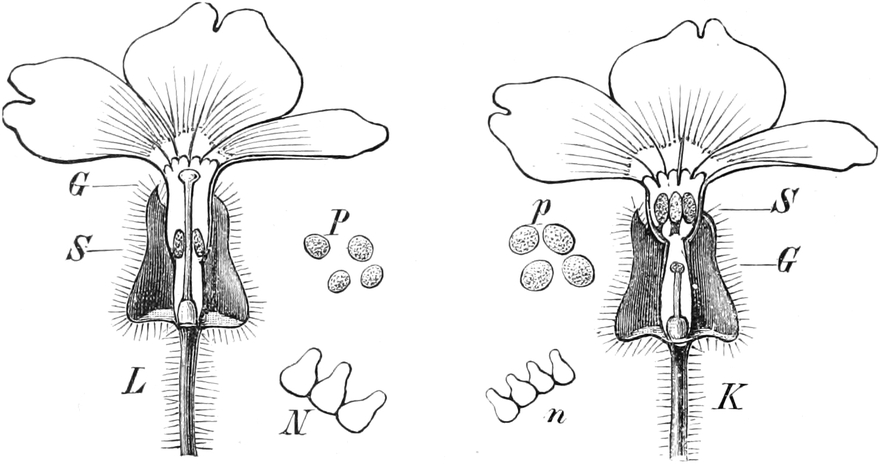
Fig. 545. Primula sinensis. Zwei heterostyle Blüten von verschiedenen Stöcken. Schwach vergrößert. L Langgriffelige, K kurzgriffelige Blütenform, G Griffel, S Staubbeutel. P Pollenkörner und N Narbenpapillen der langgriffeligen, p und n Pollenkörner und Narbenpapillen der kurzgriffeligen Form. P, N, p, n bei 110facher Vergrößerung. Nach F. NOLL.
Derartige „dimorphe“ Heterostylie finden wir noch bei Hottonia, Pulmonaria, Linum, Menyanthes; dagegen besitzen Lythrum salicaria und Oxalis-Arten dreierlei verschiedene Stellungen für Narben und Antheren, sie sind „trimorph heterostyle“ Pflanzen.
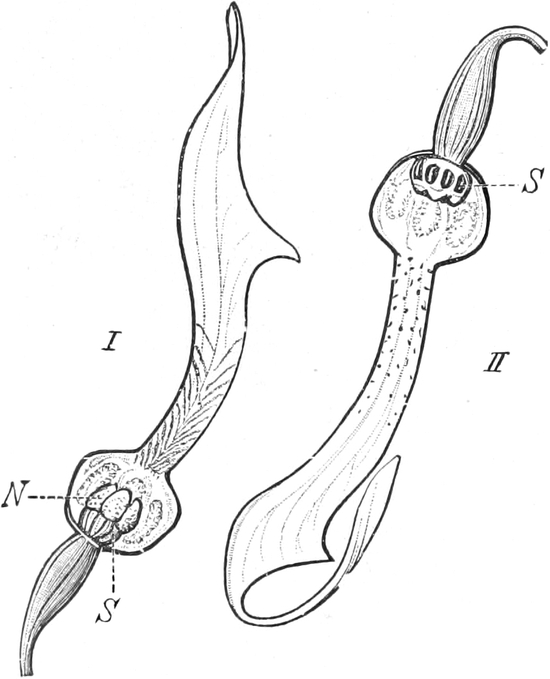
Fig. 546. Blüten von Aristolochia Clematitis, längs durchschnitten. I Junge Blüte. N Narben, S Staubbeutel. II Ältere Blüte, vgl. den Text. 2/1. Nach F. NOLL.
Bei zahlreichen Blüten ist endlich die Anordnung derartig, daß der Pollen durch seine Lage vollkommen verhindert wird, überhaupt mit der eigenen Narbe in Verbindung zu kommen. Dies Verhalten heißt Herkogamie. So trägt Iris ihre drei Antheren unter den Griffelwölbungen, Orchis heftet die beiden Pollinien über der Narbe fest, Asclepias schließt die fünf Pollinien an Griffelschwellungen mit Klemmkörperchen paarweise zusammen (vgl. Fig. 755).
Bisweilen wirken Herkogamie und Dichogamie zusammen: Die protogyne Blüte von Aristolochia Clematitis (Fig. 546) steht im ersten Blütenstadium mit geöffnetem Schlunde aufgerichtet. Kleine Insekten vermitteln die Bestäubung. Beim Einkriechen in den aufrecht stehenden Trichter können sie zwischen abwärts gerichteten Reusenhaaren hindurch in den Kessel vordringen. Ihrer Flucht aus diesem Gefängnis stehen aber eben jene Haare so lange entgegen, bis im zweiten Blütenstadium die Bestäubung der Narbe durch aus älteren Blüten mitgebrachten Pollen vollzogen ist. Dann öffnen sich die unter dem säulenförmigen Griffel befindlichen Antheren, die Blüte sinkt schlaff herab und die Insekten können mit frischem Pollen versehen über die gleichzeitig vertrocknenden Reusenhaare hinweg ins Freie gelangen und neue, jüngere Blüten aufsuchen. Alle diese mannigfaltigen und zum Teil direkt raffinierten Einrichtungen zur Erzielung der Kreuzung weisen darauf hin, daß es bei der Befruchtung darauf ankommen dürfte, derartige Geschlechtszellen zu vereinigen, die in ihren vererbbaren Eigenschaften weiter voneinander differieren, als es bei Abkömmlingen derselben Blüte der Fall sein könnte. Auch pflegen allogam erzeugte Nachkommen kräftiger zu sein als autogam entstandene.
Wenn nun trotzdem bei gewissen Pflanzen neben den für Wind- oder Insektenbestäubung eingerichteten großen chasmogamen Blüten kleine unscheinbare Blüten vorkommen, die sich niemals öffnen und nur der Selbstbestäubung dienen können, so lassen sich solche kleistogamen Blüten[461] wohl damit verständlich machen, daß diesen Pflanzen ein weiteres Propagationsmittel gegeben ist, das ihren Nachkommen wieder zu gelegentlicher Kreuzung mit Hilfe der großen chasmogamen Blüten verhelfen kann. Kleistogamie ist häufig oder regelmäßig vorhanden bei Impatiens-, Viola-, Lamium-, Stellaria-Arten, bei Specularia perfoliata, den unterirdischen Infloreszenzen von Lathraea squamaria, Juncus hufonius u. a.; Polycarpon tetraphyllum besitzt nur kleistogame Blüten.
Entwicklung der Geschlechtsgeneration bei den Samenpflanzen.
A. Bei den Gymnospermen[462] enthalten die Mikrosporen ein wenigzelliges Prothallium, das sich innerhalb der großen, später zum Pollenschlauch auswachsenden Zelle, deren Kern in Fig. 547 mit k bezeichnet ist, der Außenwand anlegt. Die ältesten (p) stellen den Rest vegetativer Prothalliumzellen dar. Auf sie folgt, als letzte abgegebene Zelle, die spermatogene Zelle (sp). Diese zerfällt früher oder später in die Mutterzelle des Antheridiums (Fig. 548 B[m]) und eine sterile Schwesterzelle, die jene an die übrigen Zellen des Prothalliums anheftet (s). Nur durch Ab- oder Auflösung der sterilen Schwesterzelle, die GOEBEL daher Dislokatorzelle nennt, kann also die Antheridium-Mutterzelle frei werden und in den Pollenschlauch einwandern. Sie bildet dabei, oder schon solange sie noch festsitzt, zwei Tochterzellen, die generativen Zellen, Spermazellen oder männlichen Geschlechtszellen.
Fig. 547. Pollenkorn von Ginkgo biloba noch innerhalb des Mikrosporangiums. Vergr. 300. Nach E. STRASBURGER.
a) Cycadeen.
Bei den Cycadeen und bei Ginkgo erhalten diese Zellen noch die Form von Spermien, so daß sie sich hierin direkt an die spermiumbildenden heterosporen Archegoniaten anschließen. Die Entwicklung ist in Fig. 548 an Zamia dargestellt, und die Figurenerklärung gibt über die Einzelheiten Auskunft. Wie die Fig. 549 (a) weiter zeigt, bleiben die beiden Rücken an Rücken ausgebildeten Spermien eine Zeitlang an der sterilen Schwesterzelle des Antheridiums haften, nach ihrer Ablösung (b) runden sie sich ab und zeigen ihr verjüngtes Vorderende mit einem schraubig den Körper umlaufenden Zilienkranze versehen, der ihre Schwimmbewegung ermöglicht (Fig. 552).
Fig. 548. Zamia floridana. Spermienbildung nach H. J. WEBBER. A Reifes Pollenkorn, 800. B, C, D Verschiedene Stadien der Antheridiumentwicklung, B, C 400, D 200. k Kern des Pollenschlauches, sp spermatogene Zelle, p erhaltene vegetative Prothalliumzelle, die (B) in die sterile Schwesterzelle s des Antheridiums hineinwächst, m Antheridium-Mutterzelle, d. h. Mutterzelle der Spermien. e Exine. In der Mutterzelle sind die großen sternförmigen Blepharoplasten bl sichtbar, welche die Zilien bilden werden, die in D als kleine Körnchen die Querschnitte des Zilienbandes zeigen. Stärkekörner sind im Pollenschlauch vorhanden, in C treten sie auch in der vegetativen Zelle und in der sterilen Schwesterzelle auf, in D erscheinen beide mit Stärke vollgepfropft, D zeigt die beiden aus der Spermienmutterzelle hervorgehenden Spermien sp durch eine Wand voneinander getrennt.
Fig. 549. Oberes Ende des Pollenschlauches von Zamia floridana mit vegetativer Prothalliumzelle p. steriler Schwesterzelle s und den beiden Spermien, a Vor Beginn der Bewegung, b nach Eintritt der Zilienbewegung. Die Prothalliumzellen sind zerrissen, die Trennung der beiden Spermien ist fortgeschritten. Nach H. J. WEBBER. Vergr. ca. 75.
Fig. 550. Zamia floridana. Frei schwimmendes reifes Spermium. Nach H. J. WEBBER. Vergr. 150.
Weibliche Zapfen von Zamia tragen eine Anzahl von Sporophyllen, deren sechseckige Oberflächenbilder genau aneinander passen. Jedes Sporophyll führt zwei Makrosporangien. Sie bestehen aus einem Nucellus und einem Integument. Zwischen den Integumenträndern bleibt über dem Nucellusscheitel die Mikropyle als offener Kanal erhalten. Zur Zeit des Stäubens der männlichen Zapfen weichen die einzelnen sechseckigen Makrosporophyllschilder auseinander, so daß der vom Winde herbeigeführte Pollen freien Zutritt findet. Auf dem Scheitel des Nucellus bildet sich zu dieser Zeit eine mehr oder minder tiefe Höhlung — die sog. Pollenkammer (Fig. 551) —, während die dabei aufgelösten Zellen, vielleicht in Gemeinschaft mit flüssiger Ausscheidung der angrenzenden Nucelluszellen, eine schleimige Masse darstellen, welche den Mikropylenkanal füllt und als Tropfen aus ihm hervorquillt. In diesen Tropfen gelangen die zwischen die Sporophylle eingedrungenen Pollenkörner und werden mit der eintrocknenden Flüssigkeit durch den Mikropylenkanal auf den Nucellus und in die Pollenkammer niedergesogen.
Fig. 551. Längsschnitt durch ein junges Makrosporangium von Ginkgo biloba nach COULTER und CHAMBERLAIN. Vergr. 35. m Mikropyle, i Integument, p Pollenkammer. e Embryosack, w Wucherung des Sporophylls.
Fig. 552. Dioon edule. Oberer Teil eines Nucellus zur Zeit der Befruchtung. Die Pollenschläuche haben sich zunächst durch seitliche Auszweigungen im Nucellusgewebe fest verankert und sind dann aus der bereits zugewachsenen Pollenkammer heraus in den Nucellus tiefer eingedrungen. Sie haben die Archegonienkammer erreicht, und aus zweien ist der Inhalt bereits entlassen. Zwei große Archegonien ragen mit ihren Halszellen in die Archegonienkammer vor. Nach CH. J. CHAMBERLAIN.
Während der geschilderten Entwicklung der Mikrosporen zu Pollenschläuchen und der Bildung ihrer Spermien (Fig. 550) wächst der im Grunde des Nucellus liegende, mit Prothalliumgewebe bereits gefüllte Embryosack mächtig heran. Wie bei den Koniferen (Fig. 558) geht er aus der Tetradenteilung einer Embryosackmutterzelle hervor, die meist wie im Makrosporangium von Selaginella alle übrigen gleichen Anlagen verdrängt hat, und von deren vier Tochterzellen nur eine Makrospore, der Embryosack übrig bleibt. Der Nucellus schwindet fast bis zum Gipfel, und der Embryosack gelangt so in die Nähe der Pollenkammer. Am Scheitel des Embryosackes sind die großen Archegonien meist in Vierzahl vorhanden, je durch einige Gewebelagen voneinander getrennt. Jedes Archegonium besitzt einen Halsteil und gibt schließlich auch eine Kanalzelle ab. Gerade über den Archegonien findet sich eine Einsenkung im Prothallium, die Archegonienkammer (vgl. Fig. 552), bei Dioon z. B. von 2 mm Durchmesser und 1 mm Tiefe. In diese Höhlung wachsen die Pollenschläuche hinein und entlassen hier, sich vielleicht unter Mitwirkung der mit Reservestoffen gefüllten Prothallium- und Dislokatorzelle apikal öffnend, ihre Spermien zugleich mit einem Tropfen wäßriger Flüssigkeit, der ihnen einige Bewegung gestattet. Sie müssen beim Eindringen in das Archegonium ihre breite Form erheblich zusammenpressen, um die schmale Pforte zwischen den aufgebrochenen Halszellen hindurch zu passieren. Das Spermium streift im Eiplasma vordringend das Zilienband ab und vereinigt sich mit dem Eikern, womit die Befruchtung vollzogen ist. (Vgl. jedoch S. 491.) Aus der Vereinigung der Kerne entsteht der Keimkern (Fig. 553), der alsbald in Teilung eintritt. In seinen Tochterkernen werden in rascher Folge stets gleichzeitig verlaufende Weiterteilungen durchgeführt, bis nach der achten Teilung etwa 256 freie Kerne den Zellraum füllen. Sie drängen ins untere Ende des befruchteten Eies, wo Zellwandbildung zwischen ihnen eintritt.
Damit ist ein sog. Proëmbryo entstanden (Fig. 554), dessen fortwachsender Scheitel von dem zunächst aus nur wenig Zellen bestehenden Embryo gebildet wird. Die weiter zurückliegenden Zellen strecken sich stark und schieben als Embryoträger oder Suspensor den Embryo in das Prothallium hinein, das bei den Spermatophyten Endosperm genannt wird und als Nährgewebe für den heranwachsenden Embryo dient. Dieser besitzt schließlich an seinem in das Prothallium vorgeschobenen Ende zwei mächtige Keimblätter oder Kotyledonen, zwischen denen sich die Anlage der Stammknospe, die Plumula, birgt. Der unterhalb der Kotyledonen befindliche Teil des Stammes heißt Hypokotyl; er geht allmählich in die Hauptwurzel oder Radicula über, die stets gegen die Mikropyle gekehrt ist.
Fig. 553. Zamia floridana. Eizelle unmittelbar nach der Verschmelzung des eingedrungenen Spermakernes mit dem Eikern. Das abgeworfene Zilienband in der Spitze des Eies. Ein zweites Spermium versucht ins Ei einzutreten. Nach H. WEBBER. Vergr. 18.
Fig. 554. Zwei junge Proembryonen von Dioon edule in ihrer Lage an der Archegonkammer. s Suspensor. e Embryo. Nach CH. CHAMBERLAIN.
b) Koniferen[463].
Die Koniferen zeigen eine vom geschilderten Entwicklungsgange abweichende Ausbildung ihrer keimenden Mikrosporen. Der Pollenschlauch entwickelt sich an der morphologischen Basis der Mikrospore. Die Prothalliumzellen, deren Zahl bei der sehr alten Gattung Araucaria (Fig. 555) größer als bei den übrigen Koniferen und Cycadeen ist, vergehen sehr bald (Fig. 556 A), und die generativen Zellen sind niemals mehr in Form von Spermien ausgebildet.
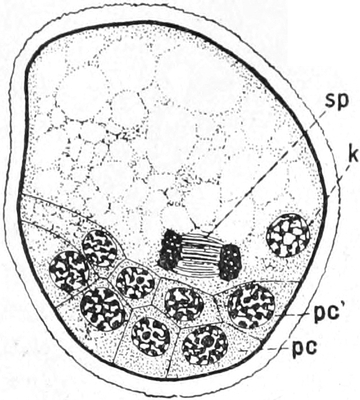
Fig. 555. Pollenkorn von Araucaria brasiliensis mit mehrzelligem Prothallium pc, pc′ und sich teilender Antheridium-Mutterzelle sp. k Pollenschlauchkern. 616. Nach L. BURLINGAME.
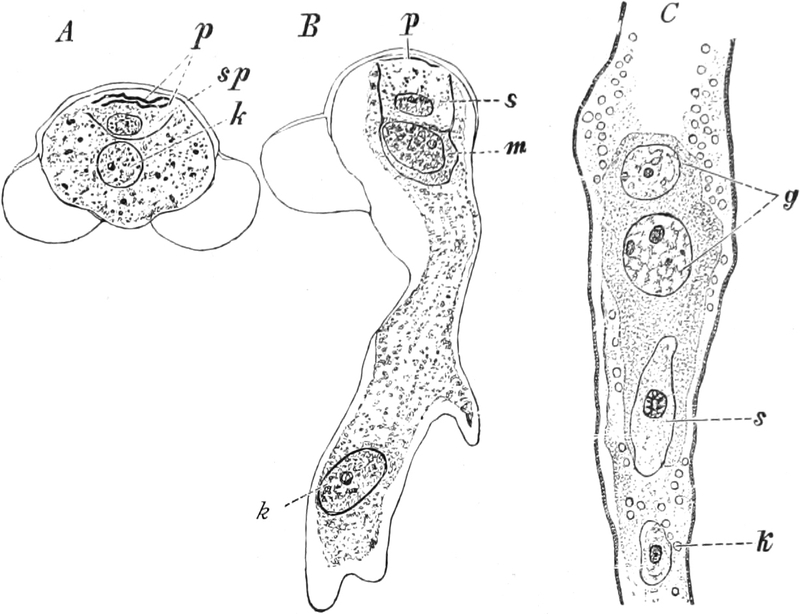
Fig. 556. Entwicklung des Pollenschlauches. A, B Pinus Laricio. 300. Nach COULTER und CHAMBERLAIN. C Picea excelsa. 250. Nach K. MIYAKE. p Reste der Prothalliumzellen. sp Spermatogene Zelle. m Antheridium-Mutterzelle, s deren sterile Schwesterzelle. g Generative Kerne von ungleicher Größe in gemeinsamer Plasmahülle. k Pollenschlauchkern.
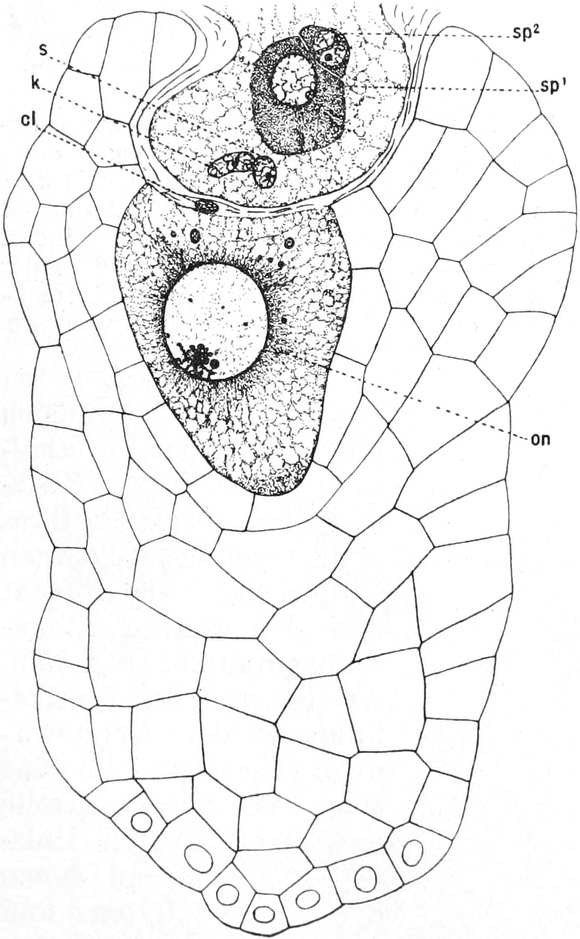
Fig. 557. Torreya taxifolia. Längsschnitt durch ein weibliches Prothallium mit großer Eizelle und Eikern (on); abgegebene Bauchkanalzelle (cl) und ein aufliegender Pollenschlauch mit Pollenschlauchkern (k), Kern der sterilen Schwesterzelle (s) und zwei Spermazellen (sp1), (sp2), von denen die größere (sp1) allein funktionsfähig ist. Nach COULTER und LAND.
Die Teilung der spermatogenen Zelle ergibt bei Araucaria neben der sterilen Zelle, dem Dislokator GOEBELS, die Antheridium-Mutterzelle, die durch eventuelles Platzen des Dislokators losgelöst wird. Sie liefert zwei zunächst gleichgroße Spermakerne in gemeinsamer Plasmahülle, doch scheint einer von ihnen häufig nach und nach zu schwinden. Das ist bei den Taxaceen zur Regel geworden. Fig. 557 von Torreya taxifolia, einer nordamerikanischen Taxacee, zeigt im Pollenschlauchende neben den Kernen des Schlauches (k) und der sterilen Schwesterzelle (s) einen sehr großen funktionsfähigen (sp1) und einen um mehr als die Hälfte kleineren, nicht fertilen Spermakern (sp2), jeder von eigener Plasmamasse umhüllt. Die Größendifferenz ist bei Taxus selbst noch erheblicher. Während nun die Cupressineen durchweg zwei gleiche Spermazellen besitzen, haben die Abietineen, ähnlich den Araucarien und Taxaceen zwei ungleich große generative Kerne in gemeinsamer Plasmamasse (Fig. 556). Der vorangehende größere allein ist fruchtbar.
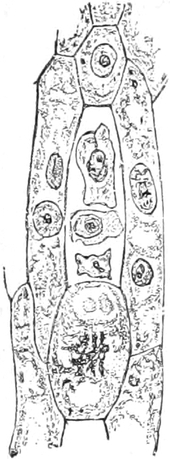
Fig. 558. Taxus baccata. Längsschnitt durch das sporogene Gewebe mit einer Embryosack-Mutterzelle, nach stattgehabter Tetradenteilung. Vergr. 250. Nach E. STRASBURGER.
Fig. 559. Medianer Längsschnitt durch die empfängnisreife Samenanlage von Picea excelsa. Vergr. 9. e Embryosack mit dem Prothallium gefüllt, a Bauchteil, c Halsteil eines Archegoniums, o Eizelle, n Eikern, nc Nucellus, p Pollenkörner auf und in der Knospenwarze, t Pollenschläuche, i Integument, s Samenflügel. Nach E. STRASBURGER.