ERSTER TEIL Allgemeine Botanik. (continued 9)
Reading edition
In den zylindrischen Zellen der Alge Mesocarpus befindet sich ein einziger Chloroplast, der die Gestalt einer rechteckigen Platte hat. Licht niedriger Intensität sucht er möglichst auszunutzen, indem er sich senkrecht zu der Richtung der Strahlen stellt (Flächenstellung); bei höherer Lichtintensität dreht sich die Platte um ihre Längsachse und bildet einen spitzen Winkel mit den Strahlen oder wendet ihnen schließlich gar die schmale Kante zu (Profilstellung), nimmt dann also sehr wenig Licht auf.
In den Blättern der Moose und der höheren Pflanzen sowie in den Prothallien der Farne wird eine Stellungsänderung der zahlreichen Chlorophyllkörner durch Verschiebung auf den Wänden der Zelle erreicht. In gemäßigtem Lichte werden die Chlorophyllkörner an denjenigen Wänden verteilt, die quer die Richtung der Lichtstrahlen schneiden (Fig. 274 T); sie gleiten aber alsbald an die den Lichtstrahlen parallel laufenden Seitenwände und werden der Lichtwirkung damit möglichst entzogen, wenn das Licht anfängt, zu stark zu werden (Fig. 274 S). Im Finstern oder bei sehr schwachem Licht kann eine dritte, aus der Fig. 274 N ersichtliche Art der Gruppierung eintreten, deren Ursache und Bedeutung hier nicht erörtert werden kann.
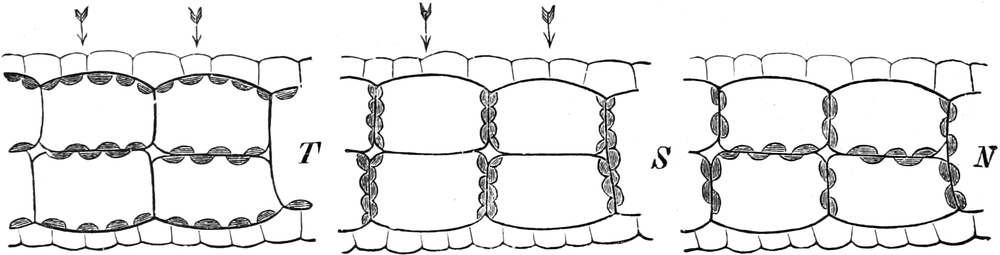
Fig. 274. Wechselnde Stellung der Chlorophyllkörner in den Zellen der untergetauchten Wasserlinse (Lemna trisulca) bei verschiedener Beleuchtung. T In diffusem Tageslicht. S In direktem Sonnenlicht. N Des Nachts. Die Pfeile geben die Richtung des einfallenden Lichtes an. Nach STAHL.
Die Chlorophyllkörner erfahren zudem bei Beleuchtungswechsel Formveränderungen; in gemäßigtem Lichte sind sie abgeflacht, in zu starkem und zu schwachem Lichte werden sie dicker und entsprechend kleiner. — Durch die Änderungen in der Anordnung der Chlorophyllkörner erscheint die Farbe grüner Organe in wechselnder Abtönung. In starker Besonnung sehen sie meist heller, in zerstreutem Licht dunkler grün aus.
2. Chemotaxis[253].
Eine Chemotaxis kommt, wie bemerkt, durch ungleiche Verteilung von im Wasser gelösten Stoffen zustande. Positive Chemotaxis führt zu einer Ansammlung der reizbaren Pflanze in der höheren Konzentration des Chemotaktikums.
Als Chemotaktikum funktionieren nicht beliebige, sondern ganz bestimmte Substanzen. So werden z. B. viele Bakterien von gewissen Nährstoffen, anorganischen wie organischen, z. B. Pepton, Zucker, Fleischextrakt, Phosphaten usf., „angelockt“; andere Stoffe, vor allem Säuren, Alkalien, „stoßen sie ab“. Steht hier die Chemotaxis im Dienste des Nahrungserwerbes, so sehen wir sie bei den Spermien eine ganz andere Bedeutung gewinnen; diese männlichen Sexualzellen finden durch chemotaktische Anlockung die Eizellen. Fig. 356 zeigt die chemotaktische Anlockung der Spermien durch die weibliche Sexualzelle bei Ectocarpus. Auch Zellkerne und Chloroplasten können chemotaktische Bewegungen ausführen.
Chemotaxis freibeweglicher Organismen wird seit PFEFFER gewöhnlich in der Weise nachgewiesen, daß man den chemotaktisch empfindlichen Organismus in Wasser auf dem Objektträger hält und mit Deckglas bedeckt, während eine Glaskapillare, die mit dem Chemotaktikum gefüllt ist, unter das Deckglas geschoben wird. Nach kurzer Zeit erfolgt eine Ansammlung der chemotaktischen Organismen vor oder in der Kapillare. Manche stellen sich, wenn sie in das Diffusionsfeld eingetreten sind, in die Richtung des Diffusionsgefälles ein und steuern direkt auf das Diffusionszentrum los (topische Reaktion). Andere kommen nur zufällig an die Mündung der Kapillare und werden dann durch phobische Reaktion am Verlassen dieser Stelle gehindert.
Die Samenfäden der Farne werden durch Äpfelsäure bzw. äpfelsaure Salze in den Hals der Archegonien gelockt; bei den Lycopodien spielt Zitronensäure, bei den Laubmoosen Rohrzucker, bei den Marchantien Eiweiß die gleiche Rolle. Es sind oft äußerst geringe Substanzmengen, die eine kräftige Reizbewegung auslösen; so genügt schon eine 0,001prozentige Lösung von Äpfelsäure zur Anlockung der in reinem Wasser ziellos umherschwärmenden Farnspermien.
Die chemotaktischen Bewegungen kommen nur dann zustande, wenn das Chemotaktikum ungleich verteilt ist, wenn also Diffusion stattfinden kann. Aber auch homogene Lösungen der Chemotaktika sind nicht ohne Einfluß auf die chemotaktisch empfindlichen Organismen; sie setzen kurz gesagt deren Empfindlichkeit herab. Man bezeichnet diejenige minimale Konzentration des Chemotaktikums, die bei Benutzung der Kapillarenmethode gerade noch zu einer sichtbaren Ansammlung führt, als Reizschwelle. Durch Verwendung einer homogenen Lösung des Chemotaktikums wird nun die Reizschwelle erhöht. Es hat sich gezeigt, daß diese Erhöhung in streng gesetzmäßiger Weise verläuft. Für Farnspermien z. B. fand PFEFFER folgende Werte:
Reizschwelle
In Wasser 0,001% Äpfelsäure
„ Äpfelsäure 0,0005 0,015% „
„ „ 0,001 0,03 % „
„ „ 0,01 0,3 % „
Man sieht also, daß immer das gleiche Verhältnis zwischen der einseitig und der allseitig wirksamen Lösung bestehen muß; erstere muß 30mal so konzentriert sein wie letztere, wenn es zu einer Ansammlung kommen soll. Diese Gesetzmäßigkeit ist unter dem Namen WEBERsches Gesetz bekannt. Das WEBERsche Gesetz der Psychophysik hat wenigstens eine große Ähnlichkeit mit dem hier konstatierten. Es darf aber nicht vergessen werden, daß es sich dort um das Verhältnis zwischen Reiz und Empfindung, hier um das Verhältnis zwischen Reiz und Reaktion handelt.
Ist die Chemotaxis durch Sauerstoff bedingt, so spricht man von Aërotaxis. Sie findet sich z. B. bei Bakterien, die aus diesem Grunde zum Nachweis der Kohlensäureassimilation Verwendung finden können (S. 213).
Findet sich hier eine positive Aërotaxis typischer Aërobionten, so zeigen umgekehrt echte Anaërobionten negative Aërotaxis, und gewisse Bakterien, die an bestimmte niedere Sauerstoffspannungen angepaßt sind, können bald positive, bald negative Bewegungen ausführen und so die optimale Sauerstoffspannung aufsuchen.
An die Chemotaxis läßt sich die Erscheinung der Hydrotaxis anschließen, eine Richtungsbewegung, die durch ungleiche Verteilung des Wasserdampfes in der Luft veranlaßt wird. Eine positive Hydrotaxis kommt den Plasmodien der Myxomyceten zu, und sie geht zur Zeit der Sporenbildung in negative Hydrotaxis über.
Außer den genannten sind noch viele andere Taxien mehr oder weniger genau bekannt. Von Osmotaxis spricht man, wenn nicht die chemische Natur, sondern lediglich die Konzentration einer Lösung zu einer Ansammlung beweglicher Organismen führt. Bei der Thermotaxis wird durch ungleiche Wärmeverteilung, bei der Galvanotaxis durch galvanische Ströme, bei der Rheotaxis durch Wasserströme die Bewegung ausgelöst.
II. Krümmungsbewegungen.
Die Arten der Krümmung, die an den Organen festsitzender Pflanzen auftreten können, werden durch Fig. 275 illustriert. Ein vierkantiges Prisma hat gleich lange Kanten; wird es aber in einer Ebene gekrümmt, so müssen die Kanten der Konkavseite notwendig kürzer werden als die der Konvexseite. Eine Verlängerung der einen Seite, oder eine Verkürzung der anderen Seite, oder endlich gleichzeitige Verlängerung und Verkürzung antagonistischer Seiten müssen zur Krümmung führen. Wenn bei dieser Einbiegung der Stab in einer Ebene bleibt, spricht man von Krümmung (II) schlechthin, wenn aber der Stab aus der Ebene in den Raum hinaustritt (dadurch, daß die Biegung um schief zu der Längsachse gelegte Linien erfolgt), dann nennt man ihn gewunden (IV). Wenn endlich der Stab im ganzen zwar gerade bleibt, seine Kanten aber Schraubenlinien beschreiben, dann nennen wir ihn gedreht oder tordiert (III); die Torsion kommt durch eine Längendifferenz zwischen der Mittellinie und sämtlichen (untereinander gleichbleibenden) Kanten zustande.
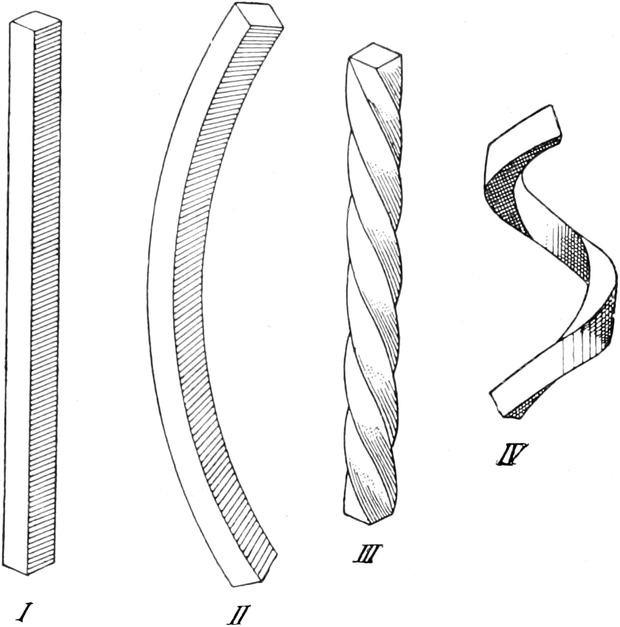
Fig. 275. Vierkantiges Prisma. I gerade, II gekrümmt, III gedreht, IV gewunden.
Mittel zur Ausführung der Krümmungen. Bei der Ausführung der Krümmungen handelt es sich, wie gezeigt wurde, stets um ungleiche Verlängerung oder Verkürzung eines Organs, also um Dimensionsänderungen. Zur Ausführung von Dimensionsänderungen aber stehen der Pflanze folgende Mittel zur Verfügung:
1. Wachstum. Es dient fast stets nur zur Verlängerung.
2. Turgordruck. Er kann, je nachdem er zu- oder abnimmt, sowohl eine Verlängerung als auch eine Verkürzung herbeiführen.
3. Wasserschwankungen in der Membran oder in toten Zellen. Sie können wieder ebensogut im Sinne einer Verlängerung wie einer Verkürzung wirken.
Nach den Mitteln, die zur Realisierung einer Dimensionsänderung Verwendung finden, kann man die pflanzlichen Krümmungsbewegungen einteilen in 1. Wachstumsbewegungen (Nutationen), 2. Turgeszenz- oder Variationsbewegungen und 3. hygroskopische Bewegungen. Da Wachstum und Turgordruck Lebenserscheinungen sind bzw. vom lebenden Protoplasma wesentlich beeinflußt werden, so sollen sie von den hygroskopischen Bewegungen getrennt behandelt werden. Denn diese letzteren sind keine Lebenserscheinungen; sie können zwar vereinzelt auch an lebenden Organen beobachtet werden, aber sie treten ebensogut an absterbenden oder an toten Organen auf, und sie werden ausschließlich von äußeren Faktoren bewirkt. Das Protoplasma ist nur insofern an diesen Bewegungen beteiligt, als es die Organe so aufbaut, daß sie bei Schwankungen des Wassergehaltes nicht einfache Längenänderungen, sondern Krümmungen erfahren.
A. Hygroskopische Bewegungen.
Bei den hygroskopischen Bewegungen kann man zwei recht verschiedene Fälle unterscheiden. Im ersten handelt es sich darum, daß die Zellwände durch Quellen sich verlängern oder durch Schrumpfen sich verkürzen. Bewegungsapparate, die auf diesem Prinzip beruhen, nennt man Quellungsmechanismen[254].
Die Quellung der Membranen hängt damit zusammen, daß das Imbibitionswasser nicht in vorgebildete Hohlräume aufgenommen wird, wie das bei dem Kapillarwasser eines porösen Körpers (Schwamm, Gips) der Fall ist, sondern daß es bei seiner Aufnahme die kleinsten Teilchen der Zellhaut auseinander drängt. Umgekehrt nähern sich diese wieder, wenn das Quellungswasser bei der Schrumpfung verdunstet. Wenn nun in einem Organ auf verschiedenen Seiten verschieden stark quellbare Schichten abgelagert sind, so müssen notwendig mit jeder Anfeuchtung und mit jedem Wasserverlust Krümmungen zustande kommen. Obwohl es sich dabei um rein physikalische Erscheinungen handelt, so können diese doch eine große Bedeutung für die Pflanze haben.
Das Aufspringen und Aufreißen reifer Samenbehälter ist die Folge ungleicher Kontraktionen beim Austrocknen. Hierbei werden oft Spannungen erzeugt, die bei plötzlicher Überwindung des Hindernisses die Samen weit fortschleudern (Euphorbiaceen, Geranium u. a.). Man nennt dieses Aufspringen beim Austrocknen Xerochasie. Im Gegensatz dazu findet umgekehrt bei manchen Wüstenpflanzen ein Öffnen der Früchte und die Ausstreuung der Samen bei Befeuchtung statt (Hygrochasie). Das beste Beispiel hierfür sind die Früchte von Mesembryanthemum linguiforme („Auferstehungssterne“). Ebenso verhält sich die „Jerichorose“ (Anastatica hierochuntica). Diese zeichnet sich auch noch dadurch aus, daß die in frischem Zustand wie ein gewöhnliches niederliegendes Kraut erscheinende Pflanze im Zustand der Fruktifikation beim Austrocknen durch ungleiche Längenveränderung der Ober- und Unterseite der Äste zu einer Kugel sich einkrümmt. Bei Wasseraufnahme nimmt die Pflanze ihre ursprüngliche Gestalt wieder an und öffnet ihre Früchte; die Samen werden also nur ausgestreut, wenn sie Keimungsbedingungen finden. An Anastatica schließen sich einige andere Pflanzen an, die zum Teil den gleichen Namen „Jerichorose“ führen (Odontospermum). Einzelne Früchte führen beim Wechsel ihres Wassergehaltes nicht nur Krümmungen, sondern auch Torsionen und Windungen aus, wie besonders die Teilfrüchtchen von Erodium gruinum (Fig. 276), die Früchte von Stipa pennata und von Avena sterilis. Diese Bewegungen führen dazu, den Samen in die Erde zu vergraben. Liegt eine Erodiumfrucht von der Gestalt der Fig. 276 A mit beiden Enden dem Boden auf, so macht ihre Spitze bei wechselndem Wassergehalt der Luft eine bohrende Bewegung. Die an ihr befindlichen schräg gerichteten Haare wirken dann so, daß nur ein Eindringen nach unten möglich ist.
Eine wichtige Rolle fällt den Quellungskrümmungen auch bei der Entleerung der Mooskapseln zu: an diesen sind es die Zähne des Peristoms, die durch ihre Bewegungen die Kapselöffnung hygroskopisch verschließen oder öffnen. Bei den Schachtelhalmen führt die in Form zweier paralleler Bänder sich ablösende Außenwand der Sporen sehr lebhafte hygroskopische Bewegungen aus.
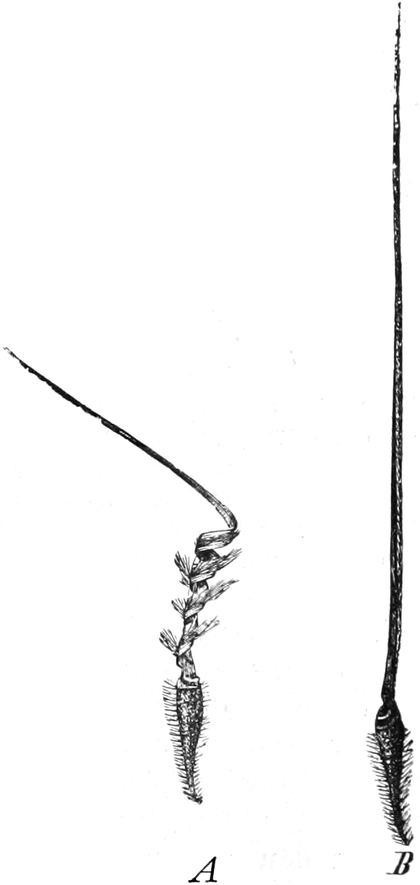
Fig. 276. Teilfrüchtchen von Erodium gruinum. A in trockenem Zustande, aufgerollt. B in feuchtem Zustande, gerade gestreckt. Nach NOLL.
Um die Quellungsbewegungen hervorzurufen, ist eine direkte Benetzung nicht notwendig; die Membranen kondensieren bei wechselndem Feuchtigkeitsgehalt der Luft wechselnde Mengen Wasser; sie sind hygroskopisch. Deshalb benutzt man z. B. die Grannen von Erodium zur Messung der Luftfeuchtigkeit in Hygrometern und „Wetterhäuschen“.
Den Quellungsmechanismen werden die Kohäsionsmechanismen[255] gegenübergestellt. Sie unterscheiden sich von jenen dadurch, daß die Zellwände während der Ausführung der Bewegung mit Wasser imbibiert bleiben. Bei eintretendem Wasserverlust verkleinert sich hier der Innenraum der Zelle. Als Beispiel für eine solche Krümmung betrachten wir die Bewegung des Polypodiaceensporangiums beim Austrocknen. Diese Sporangien sind gestielte, bikonvexe Körper, die innerhalb einer einschichtigen Wand die Sporen enthalten. Während im allgemeinen die Zellwände dünn sind, umgibt den Rand des Sporangiums etwa in der Ausdehnung eines Halbkreises ein sog. Ring (Annulus) von eigenartig verdickten Zellen (Fig. 277 R). Sie haben (Fig. 277, 2) dünne Außenwände, nach innen sich verdickende Seitenwände und dicke Innenwände. Trockener Luft ausgesetzt, verlieren die Annuluszellen allmählich ihr Füllwasser. Es kommt aber nicht zu einer Loslösung des wäßrigen Inhaltes von der Zellwand und auch nicht zu einem Zerreißen der Flüssigkeit in sich, weil die Adhäsion an die Wand und die Kohäsion der Wassermoleküle untereinander sehr groß ist, mehr als 300 Atmosphären beträgt. Dagegen folgt die Zellwand unter Deformation dem abnehmenden Füllwasser: unter Einstülpung der zarten Außenmembranen (Fig. 277, 3) nähern sich die derben seitlichen Zellwände einander und so entstehen sehr energische einseitige Verkürzungen des Kohäsionsgewebes, die zur Öffnung des Sporangiums führen. Dabei bleibt die Mehrzahl der Sporen an der Sporangiumwand haften. Nun aber tritt bei fortgesetzter Wasserverdunstung der Augenblick ein, da der Wasserrest dem wachsenden Zug der gespannten Membranen nicht mehr Widerstand zu leisten vermag. Die Flüssigkeit in den Annuluszellen reißt plötzlich in sich selbst, oder sie löst sich von der Wand los, und der Annulus springt unter Ausschleudern der Sporen in seine Anfangsstellung zurück. Er stellt also eine Wurfmaschine dar, welche die Sporen ziemlich weit ausstreut und ihnen so günstigere Entwicklungsbedingungen schafft, als wenn alle an einer Stelle niederfielen.
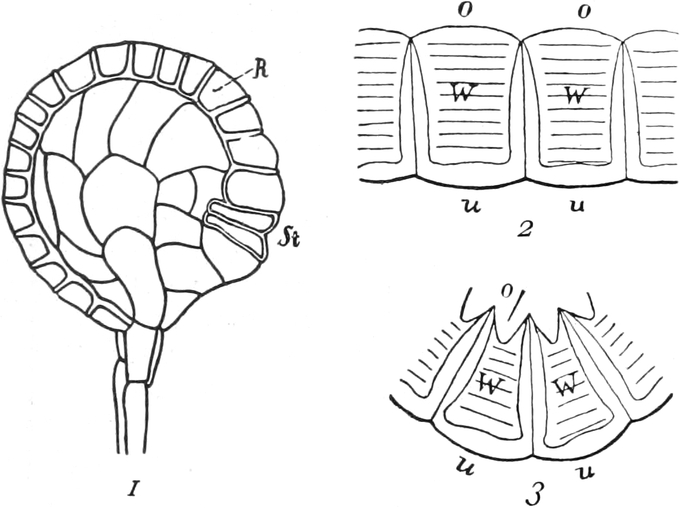
Fig. 277. 1 Sporangium von Polypodium falcatum nach CAMPBELL. R Ringzellen. St Stomium. 2 Ringzellen in ursprünglichem Zustand, gerade. 3 Nach teilweiser Verdunstung des Füllwassers W; die oberen Zellwände o eingestülpt, die unteren u in ihrer ursprünglichen Länge. 2, 3 nach NOLL.
Kohäsionsmechanismen sind auch bei anderen Sporangien höherer Kryptogamen sowie in der Wandung der Staubbeutel ausgebildet und bewirken deren Öffnen. — Manche hygroskopische Krümmungen kommen durch gemeinsame Wirkung von Quellung und Kohäsion zustande.
B. Krümmungsbewegungen an der lebenstätigen Pflanze.[256]
Wie bei der lokomotorisch tätigen, so treten auch an der festgewachsenen Pflanze die Bewegungserscheinungen einesteils schon ein, wenn alle allgemeinen Bedingungen für die Lebenserscheinungen gegeben sind, andernteils aber erst dann, wenn ein bestimmter Faktor (Reiz) sich geltend macht, der entweder nur das Maß der Krümmung oder auch ihre Richtung bedingt. Man nennt die Bewegungen, die ohne solche spezifische äußere Reize erfolgen, autonome, die anderen induzierte oder paratonische.
1. Autonome Krümmungsbewegungen.
Wie bemerkt, genügt ein gewisses Ausmaß der äußeren Faktoren, an die das Leben gebunden ist (S. 185), um diese Krümmungen zu ermöglichen. Überschreitung ihres Minimums oder ihres Maximums führt zu Starrezuständen, macht die Pflanze bewegungslos. So kennen wir Kälte-, Wärme-, Dunkel-, Trockenstarre usw. Auch chemische Schädigungen (Giftwirkungen) führen zu Starrezuständen.
Eine autonome Bewegung ist auch das geradlinige Wachstum des Sprosses und der Wurzel mit seiner charakteristischen, rein aus inneren Ursachen entspringenden großen Periode. Eine ganze Reihe von Wachstumskrümmungen (Nutationen) schließt sich ihm an; ja, man kann wohl sagen, es gibt überhaupt kaum irgendwo wirklich geradliniges Wachstum. Die Spitzen der Organe beschreiben vielmehr eine außerordentlich unregelmäßige Kurve im Raume, sie führen die von DARWIN entdeckten „Zirkumnutationen“ aus. Sind diese Krümmungen auch gewöhnlich so unbedeutend, daß man sie ohne besondere Hilfsmittel nicht wahrnehmen kann, so fehlt es doch nicht an Organen, die sehr auffallende und regelmäßig verlaufende autonome Wachstumskrümmungen zeigen.
So ist die Entfaltung der meisten Laub- und Blütenknospen eine Nutationsbewegung, die durch stärkeres Wachstum der Oberseite (Epinastie) der jugendlichen Blätter erfolgt. Besonders auffällig tritt das bei den in der Jugend durch verstärktes Wachstum der Unterseite (Hyponastie) eingerollten Blättern der Farne und mancher Cycadeen hervor. Der Keimstengel zahlreicher Pflanzen nimmt bei seinem Austritt aus dem Samen häufig eine scharfe Krümmung an, die ihm beim Durchbrechen des Bodens zustatten kommt, und eine ähnliche, mit dem Zuwachs der Triebe nach vorn weiterrückende Nutationskrümmung zeigen u. a. die Sprosse des wilden Weins (Parthenocissus quinquefolia).
Besonders auffällig werden die Nutationsbewegungen, wenn das Wachstum nicht eine Seite bevorzugt, sondern abwechselnd verschiedene Seiten fördert. Sehr schön läßt sich das an Blütenschäften der Küchenzwiebel beobachten. Diese zuletzt senkrecht gestellten Sprosse krümmen sich im halb erwachsenen Zustande oft derart, daß der Gipfel den Boden berührt. Solche Krümmungen sind aber nicht von langer Dauer, der Schaft streckt sich vielmehr wieder gerade, um bald darauf nach einer anderen Seite sich zu beugen.
Rückt die im Wachstum geförderte Seite in bestimmter Richtung rings um den Stengel herum, so wird dieser eine gleichsinnige kreisende Bewegung mit seinem Gipfel ausführen (kreisende oder rotierende Nutation). Diese Bewegungsform tritt vornehmlich ausgeprägt bei Ranken und Sprossen von Kletterpflanzen auf und ermöglicht es ihnen, Stützen in ihrem Bereiche sicher aufzufinden. In beiden Fällen wird neuerdings eine wesentliche Beteiligung von Geotropismus und Autotropismus angenommen und die reine Autonomie der Bewegung bezweifelt.
Neben diesen durch Wachstum bedingten Nutationen finden sich auch, aber freilich ungleich seltener, autonome Variationsbewegungen (S. 294); sie sind fast ganz auf Laubblätter beschränkt, und zwar auf solche, die an der Basis des Stieles, oder auch an der Basis ihrer weiteren Auszweigungen, Gelenkpolster besitzen. Sie finden sich vor allem bei Leguminosen und Oxalideen, doch auch bei Marsilia, und zeichnen sich durch einen Bau aus, der ihrer Funktion sehr zustatten kommt.
In den gewöhnlichen Parenchymzellen wird die Zellhaut allmählich fast ganz entspannt; deshalb kontrahieren sich ausgewachsene Zellen bei Plasmolyse nicht in dem Maße wie wachsende Zellen (vgl. Fig. 237), und sie werden umgekehrt bei einer Steigerung des Binnendruckes nur wenig gedehnt, weil sie derbwandig sind. In einzelnen Fällen aber, und zu diesen gehören gerade die Parenchymzellen der Gelenkpolster, bleibt die Zellhaut auch im ausgewachsenen Zustande durch den Turgordruck ganz beträchtlich gedehnt. Das sieht man nicht nur bei Ausführung der Plasmolyse, sondern man merkt es schon an der bestehenden lebhaften Gewebespannung.
Ein solches Gelenk einer Leguminose, z. B. der Bohne, zeigt die Leitbündel und das Sklerenchym, die im Blattstiel (Fig. 278, 1) peripher angeordnet sind, zu einem zentralen, leicht biegsamen Strange vereinigt, der von einer mächtigen Hülle von Parenchym umgeben ist (Fig. 278, 2 u. 3). Wird aus dem durch zwei Querschnitte isolierten Gelenk eine mittlere Gewebeschicht herausgespalten (Fig. 278, 4), so zeigt sich schon an der Vorwölbung des Rindenparenchyms, oben und unten, die starke Spannung. Längsspaltungen, wie sie in Fig. 278, 5 angedeutet sind, lassen das Expansionsbestreben des Parenchyms gegenüber dem Leitbündel auf das deutlichste erkennen.
Es ist nun leicht einzusehen, daß eine allseitige Zunahme des Turgordruckes die Spannung zwischen Leitbündel und Parenchym steigert, somit die Festigkeit des Gelenkes erhöht. Dagegen wird eine einseitige Zunahme des Druckes, oder eine Abnahme des Turgordruckes auf der Gegenseite, oder endlich das Eintreten beider Prozesse zugleich eine Verlängerung der einen, eine Verkürzung der anderen Seite herbeiführen, wobei sich natürlich das Gelenk krümmt. Das Leitbündel wird dabei ebenfalls gebogen, es erfährt indes keine Veränderung in der Länge. Mit der Krümmung des Gelenkes ist aber eine passive Bewegung des ansitzenden Blattteiles verbunden.
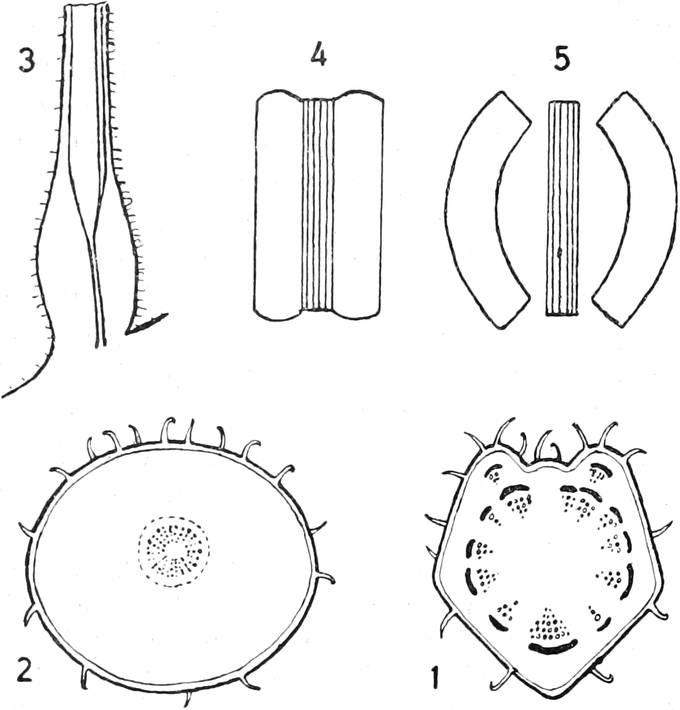
Fig. 278. 1 Querschnitt durch den Blattstiel der Buschbohne. 2 Desgl. durch das Gelenkpolster. 3 Längsschnitt durch das Gelenkpolster mit Übergang zum Blattstiel. 4 Mittlere Lamelle, in Wasser liegend. 5 Dieselbe nach Abtrennung der Rinde vom Leitbündel. 4 und 5 nach SACHS. Alles schwach vergrößert.
Autonome Variationsbewegungen fehlen wahrscheinlich keinem mit Gelenk versehenen Blatte; auffällige Dimensionen nehmen sie aber nur bei wenigen Pflanzen an.
So schwingen z. B. die kleinen Seitenblättchen von Desmodium gyrans in lang gestreckten Ellipsen bald gleichmäßig, bald mehr ruckweise. Bei relativ hoher Temperatur (30–35°) wird ihre Bewegung äußerst lebhaft, ein Umgang kann in einer halben Minute vollendet werden. Noch lebhafter schwingen die Blättchen von Oxalis hedysaroides, ihre Spitzen können einen Weg von 0,5 bis 1,5 cm in einer oder in wenigen Sekunden zurücklegen. Während die autonomen Bewegungen beider Pflanzen vom Licht gar nicht beeinflußt erscheinen, werden diejenigen von Trifolium pratense am Licht fast völlig unterdrückt; im Dunkeln aber macht das Endblatt Schwingungen von oft über 120 Bogengraden, die sich in 2–4stündigem Rhythmus wiederholen.
2. Paratonische Bewegungen (Reizbewegungen)[257].
Bei den induzierten oder paratonischen Bewegungen wirkt stets ein äußerer Faktor als Reiz, der die Bewegung auslöst. Nur durch solche Reizbewegungen bringen festgewachsene Organismen ihre einzelnen Organe in diejenige Stellung, in der sie ihre Funktion am besten ausüben können. Wenn die Organe einer Keimpflanze einfach in der Richtung weiter wüchsen, die sie bei der Ausstreuung des Samens zufällig einnehmen, müßten nicht selten die Wurzeln in die Luft, die Stengel in die Erde gelangen.
Licht, Wärme, Schwerkraft, stoffliche und mechanische Einflüsse der verschiedensten Art geben der Pflanze Mittel, sich in der Welt zu orientieren. Dabei verhalten sich verschiedene Organe einer Pflanze oft ganz verschieden gegen ein und dieselbe äußere Einwirkung. Die Stengel z. B. wachsen zum Licht hin, die Wurzeln vom Licht weg; beide wachsen in der Richtung der Strahlen weiter; die Blätter dagegen stellen sich mit ihren Flächen ungefähr senkrecht zu den einfallenden Strahlen. — Aber diese Reaktionsweise ist keine ein für allemal gegebene, sondern sie kann sich weitgehend ändern. Man sagt dann wohl, die „Stimmung“ der Pflanze habe sich geändert, und konstatiert, daß solcher Stimmungswechsel teils durch innere Zustände, teils auch durch Außenfaktoren bestimmt wird.
Als Richtungsbewegungen oder Tropismen werden wir diejenigen Bewegungen zusammenfassen, die eine bestimmte Lage zu der Richtung des wirkenden Reizes herbeiführen. — Die übrigen Krümmungsbewegungen nennen wir Nastien; es sind durchweg Bewegungen, die zu einer bestimmten Lage in Beziehung auf die Pflanze, nicht in Beziehung auf die Richtung des Reizmittels führen.
a) Tropismen.
Bei den Richtungsbewegungen hat man orthotrope (parallelotrope) und plagiotrope Organe zu unterscheiden. Erstere stellen sich in die Richtung des Reizes, indem sie sich der Reizquelle nähern (positive Reaktion) oder sich von ihr entfernen (negative Reaktion). Die plagiotropen Organe stellen sich senkrecht oder schief zur Richtung des Reizes. Die Reaktionsweise eines bestimmten Organs kann durch äußere und innere Einflüsse eine Änderung erfahren. Je nach dem wirksamen Reiz werden diese Richtungsbewegungen als geotropische, phototropische usw. bezeichnet.
Die Tropismen der festgewachsenen Pflanzen entsprechen den Taxien der freibeweglichen. Ihre Bedeutung liegt wie dort in dem Aufsuchen günstiger Lebensbedingungen. Die wirksamen Reize, die positive bzw. negative Reaktionsweise sowie der Wechsel zwischen beiden sind vollkommen analog den bei den Taxien geschilderten Erscheinungen.
1. Geotropismus[258].
Es ist eine Erfahrungstatsache, daß die Stämme eines Tannenwaldes exakt lotrecht und demnach untereinander parallel stehen; die Äste und Blätter solcher Bäume aber nehmen andere Lagen ein. Betrachten wir statt eines Baumes die Keimpflanze von Zea, so finden wir, zunächst wenigstens, ausschließlich Organe, die sich in die Lotlinie einstellen. Zugleich aber bemerken wir hier leichter als an einem Baume das total verschiedene Verhalten der Wurzel und des Sprosses. Beide stehen in der Lotlinie, aber der Sproß verlängert sich in ihr aufwärts, die Wurzel abwärts. Bringen wir die Keimpflanze aus dieser ihrer natürlichen Lage heraus, legen wir sie z. B. horizontal, so sehen wir in beiden Organen eine Krümmung eintreten; die Wurzel krümmt sich abwärts, der Keimsproß aber aufwärts. Da diese Krümmungen nicht an der Stelle ausgeführt werden, wo Sproß und Wurzel zusammenstoßen, vielmehr in der Nähe der Spitze beider Organe, so bleibt ein je nach Umständen verschieden großes Stück der Achse horizontal gerichtet, und nur die beiden Enden werden durch die Krümmung in die natürliche Lage zurückgebracht, in der dann auch der weitere Zuwachs erfolgt. Daß die Schwerkraft es ist, die diesen aufrechten Wuchs der Hauptachse und der Hauptwurzel bedingt, das ergibt eigentlich schon die direkte Beobachtung, die zeigt, daß diese Organe auf unserer ganzen Erdkugel in der gleichen Weise orientiert sind, eben in der Richtung der Erdradien; denn außer der Schwerkraft kennen wir keine überall gegebene, in der Radiusrichtung wirkende Kraft. Doch nicht auf Grund dieses Gedankenganges, sondern durch die Versuche von KNIGHT (1806) hat sich in unserer Wissenschaft diese Erkenntnis Bahn gebrochen. KNIGHTs Versuche beruhen auf folgender Überlegung: Offenbar kann die Schwerkraft nur dann die Wurzel zum Abwärtswachsen, den Stamm zum Aufwärtswachsen veranlassen, wenn der Same in Ruhe und in derselben relativen Lage zur Richtung der Erdanziehung verbleibt; deshalb vermutet KNIGHT, „daß eine solche Beeinflussung durch stetigen und schnellen Wechsel der Lage des keimenden Samens aufgehoben werden könne, und daß man ferner in der Lage wäre, durch das Mittel der Zentrifugalkraft eine Gegenwirkung auszuüben“.
Er befestigte also am Rande eines Rades eine Anzahl von keimenden Samen in möglichst verschiedenen Lagen, so daß die austretenden Wurzeln nach außen, nach innen und zur Seite hervorwachsen mußten, und ließ dieses Rad um eine horizontale Achse rotieren. Da er aber dem Rade eine sehr ansehnliche Geschwindigkeit erteilte, so wurde nicht nur die einseitige Wirkung der Schwerkraft aufgehoben, sondern gleichzeitig eine recht beträchtliche Zentrifugalkraft erzeugt, die nun ihrerseits die Keimlinge beeinflußte. Als Resultat ergab der Versuch, daß sämtliche Wurzeln radial nach außen, sämtliche Sprosse radial nach dem Zentrum des Rades wuchsen. Die Pflanze reagiert also auf die Zentrifugalkraft gerade so wie auf die Schwerkraft.
Ein anderes Experiment, das ebenfalls KNIGHT schon ausgeführt hat, läßt Schwerkraft und Zentrifugalkraft gleichzeitig, aber in verschiedener Richtung auf die Keimlinge einwirken. Die Pflanzen werden in Vertikalstellung auf einer horizontalen Scheibe befestigt, die um eine vertikale Achse rotiert, und wenn nun der Abstand der Pflanzen vom Zentrum und die Rotationsgeschwindigkeit so gewählt wird, daß der mechanische Effekt von Schwerkraft und Zentrifugalkraft gleich ist, dann wachsen die Wurzeln nach außen und unter 45° nach unten, die Stengel nach innen und unter dem gleichen Winkel nach oben; wird aber die Rotation gesteigert, so nehmen die Keimachsen immer mehr eine der Horizontalen sich nähernde Lage an. Daraus muß man schließen, daß die senkrecht nach unten wirkende Kraft nicht nur in ihrer Richtung, sondern auch in ihrer Größe mit der Schwerkraft übereinstimmt, d. h. daß sie eben wirklich die Schwerkraft ist. Die Pflanze vermag also zwischen Schwerkraft und Zentrifugalkraft keinen Unterschied zu machen. Beide Kräfte aber haben das miteinander gemein, daß sie den Körpern eine Massenbeschleunigung erteilen. Für die experimentelle Erforschung des Geotropismus ist diese Tatsache von größter Bedeutung, da man nur die Zentrifugalkraft, nicht aber die Schwerkraft in ihrer Intensität variieren kann.
Eine sehr wesentliche Ergänzung zu den KNIGHTschen Fundamentalversuchen brachten dann erst sehr viel später (1874) die Experimente von SACHS. Wie im ersten KNIGHTschen Versuche wurden auch in den Versuchen von SACHS die Pflanzen an der horizontalen Achse gedreht, aber die Geschwindigkeit der Umdrehung wurde sehr gering gewählt, so daß eine Umdrehung in 10–20 Minuten erfolgte. Dabei konnten nennenswerte Zentrifugalkräfte nicht entwickelt werden; da aber durch die fortwährende Drehung jede einseitige Schwerewirkung eliminiert ist, so wachsen Wurzeln und Sprosse in jeder beliebigen Richtung, die man ihnen zu Anfang gegeben hat. SACHS benutzte zu solchen Versuchen ein Drehwerk, das er Klinostat genannt hat.
Die Eigenschaft der Pflanze, unter dem Einfluß der Erdschwere eine bestimmte Lage einzunehmen, bezeichnet man als Geotropismus. Es hat sich gezeigt, daß es nicht nur orthotrope Organe gibt, die sich in die Richtung der Schwerkraft einstellen und dabei positiv geotropisch (nach unten) oder negativ geotropisch (nach oben) wachsen, sondern auch plagiotrope, die eine horizontale oder schräge Ruhelage besitzen. Die Stellungen der Seitenorgane sind also gleichfalls — wenn auch gewöhnlich nicht ausschließlich — von der Schwerkraft bedingt.
Negativ geotropisch sind alle gerade lotrecht nach oben wachsenden Pflanzenteile, seien es Stengel, Stämme, Blätter (von Liliifloren), Blütenschäfte, Blütenteile oder Wurzeln (wie die senkrecht aus dem Schlamm oder der Erde aufsteigenden Atemwurzeln von Sonneratien [Fig. 186, S. 143], Palmen u. a.). Werden derlei Organe aus ihrer aufrechten Lage herausgebracht, dann richten sie sich, soweit sie noch wachstumsfähig sind, wieder auf. Die Krümmung erfolgt durch das gesteigerte Wachstum der erdwärts gerichteten Flanke und das verminderte Wachstum der Gegenseite; die Folge ist eine Aufrichtung des fortwachsenden Endes.
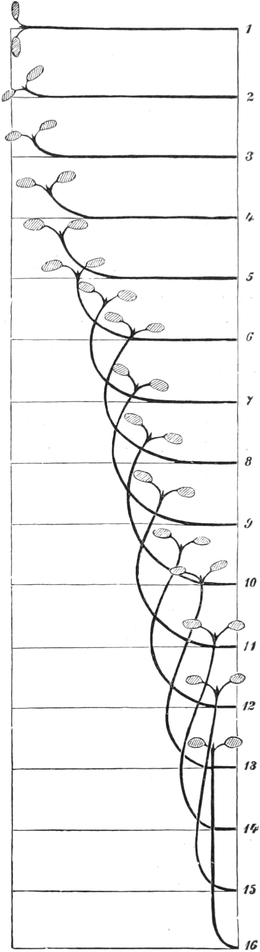
Fig. 279. Verlauf einer geotropischen Bewegung. Die Figuren 1–16 bezeichnen aufeinanderfolgende Stadien der geotropischen Krümmung einer im Halbdunkel erwachsenen Keimpflanze. Diese bei 1 horizontal gelegt, bei 16 wieder völlig aufgerichtet. Für die Zwischenstadien vgl. den Text. Schematisiert. Nach NOLL.
Der tatsächliche Verlauf der geotropischen Krümmung eines Stengels wird durch Fig. 279 dargestellt; sie zeigt, daß dieser Vorgang ein recht komplizierter ist. Eine im Halbdunkel erwachsene Pflanze wird in Nr. 1 horizontal gelegt. Ihr Wachstum ist dicht hinter den Keimblättern am lebhaftesten; deshalb tritt an dieser Stelle die erste geotropische Krümmung auf (Nr. 2, 3). Allmählich greift dann die Krümmung immer weiter basal um sich, geht also immer mehr auf die langsamer wachsenden Teile über. An der Grenze der Wachstumszone macht sie dann halt. Durch die Krümmung der Basalstücke werden (Nr. 7, 8) die Apikalstücke über die Vertikallinie hinausgeführt, es tritt eine „Überkrümmung“ ein. Eine solche muß sich aber auch schon deshalb ergeben, weil jede geotropische Reizung nicht mit dem Moment des Einrückens in die Ruhelage aufhört, sondern noch lange nachwirkt. — Die Überkrümmung muß aber aus einem doppelten Grunde wieder verschwinden (Nr. 13–16). Einmal muß in dem übergekrümmten Teil eine neue, der bisherigen entgegengesetzte geotropische Krümmung ausgelöst werden; außerdem aber kombiniert sich mit dieser ein Bestreben, das man Autotropismus nennt (S. 315).
In einzelnen Fällen sind negativ geotropische Krümmungen auch an „ausgewachsenen“[259] Sprossen möglich, d. h. an solchen, die ohne einen geotropischen Reiz kein Längenwachstum mehr zeigen. So wird an verholzten Zweigen und Stämmen, die aus der Ruhelage gekommen sind, durch einen geotropischen Reiz das Kambium der Unterseite zu einem Längenwachstum veranlaßt, das dann zu einer Aufrichtung des Organs führt. Diese erfolgt um so langsamer und unvollkommener, je größer der Widerstand des passiv zu krümmenden Teils ist. Auch die sog. Knoten der Grashalme, die in Wirklichkeit Blattpolster (Fig. 138) sind, werden durch geotropischen Reiz zu neuem Wachstum angeregt. Erfolgt dieser Reiz allseitig, dreht man also den Grasknoten um seine horizontal gelegte Längsachse auf dem Klinostaten, so fangen alle Parenchymzellen gleichmäßig an, sich zu verlängern; wird aber der Knoten einfach horizontal gelegt, so beschränkt sich das Wachstum auf die Unterseite, während die Oberseite passiv komprimiert wird (Fig. 280). Durch solche Krümmungen in einem oder in mehreren Knoten werden die durch Wind oder Regen gelagerten Grashalme wieder aufgerichtet.
Positiver Geotropismus wird vornehmlich bei Pfahlwurzeln, vielen Luftwurzeln und den Keimsprossen mancher Liliaceen sowie den Rhizomen von Yucca beobachtet. Diese Organe erreichen die senkrechte Richtung nach abwärts aus jeder anderen Stellung und behalten sie dauernd bei. Die positiv-geotropischen Bewegungen werden ebenso wie die negativ-geotropischen durch aktives Wachstum ausgeführt. Die Wurzel sinkt also nicht etwa dem Gewichte ihrer Spitze folgend passiv in den Boden, sondern sie vermag einen das eigene Gewicht weit übertreffenden Gegendruck zu überwinden, kann also z. B. in das spezifisch viel schwerere Quecksilber eindringen. Bei der Krümmung wird das Wachstum auf der Oberseite gefördert, auf der Unterseite gemindert, während die Mittellinie mit unveränderter Geschwindigkeit weiter wächst[260]. Fig. 281 stellt den Verlauf der geotropischen Krümmung an der Wurzel dar.
Plagiogeotropisch sind viele Seitenzweige und Seitenwurzeln erster Ordnung. Diese Organe sind in der Ruhelage, wenn ihre Längsachse einen bestimmten Winkel mit der Lotrichtung bildet. Sehr häufig wird übrigens die natürliche schiefe Stellung von Pflanzenteilen nicht durch Geotropismus allein bewirkt. — Ein besonderer Fall von Plagiogeotropismus liegt in der horizontalen Ruhelage von Organen vor. Es sind besonders Rhizome und Stolonen, die solchen Transversalgeotropismus (Diageotropismus) zeigen und die aus jeder anderen Stellung mit der fortwachsenden Spitze immer wieder in die wagerechte Richtung zurückkehren, vorausgesetzt, daß sie sich in der richtigen Tiefenlage befinden. Ist das nicht der Fall, so wird zunächst durch aufwärts oder abwärts gerichtete Bewegungen diese erstrebt, und dann erst folgt horizontales Wachstum. Seitenzweige und Seitenwurzeln höherer Ordnung sind oft gar nicht geotropisch und stehen nach allen Seiten vom Mutterorgan ab.
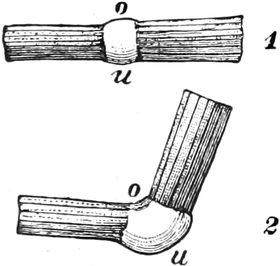
Fig. 280. Geotropische Aufrichtung eines Grasblattpolsters. 1 Der vorher aufrechte Halm horizontal gelegt. 2 Die Unterseite u des Polsters stark verlängert, die Oberseite o unverlängert (sogar etwas verkürzt). Die dadurch bedingte Krümmung hat das jüngere Halmstück um etwa 75° emporgerichtet. Nach NOLL.
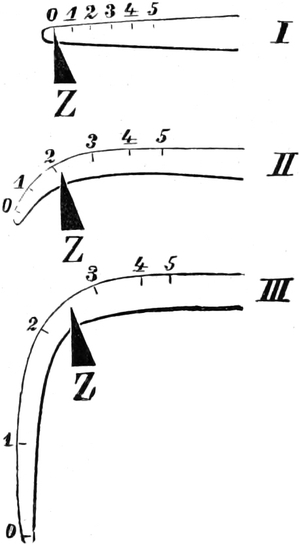
Fig. 281. Geotropische Krümmung einer Wurzel (Keimwurzel von Vicia Faba). I Die vorher senkrecht abwärts gewachsene Wurzel wagerecht gelegt und mit Tuschemarken versehen. II Dieselbe Wurzel nach 7 Stunden. III Dieselbe Wurzel nach 23 Stunden, wieder senkrecht abwärts gerichtet. Z Ein fester Index. Nach SACHS.
Eine besondere Art der geotropischen Orientierung tritt bei dorsiventralen Organen (Laubblättern, zygomorphen Blüten, S. 62) auf. Alle diese Organe bilden, ebenso wie die radiären plagiotropen, einen bestimmten Winkel mit der Lotlinie, sind aber nur dann in der Ruhelage, wenn auch die Dorsalseite nach oben, die Ventralseite nach unten schaut, während es bei radiären Organen nicht darauf ankommt, welche Flanke gerade oben liegt, wenn nur die Organ-Achse die richtige Neigung hat. Bei der Orientierung dorsiventraler Organe reichen dementsprechend einfache Krümmungen häufig nicht aus, sondern es kommt zu Torsionen.
Die Drehung der Fruchtknoten vieler Orchideen, der Blüten von Lobeliaceen, der Blattstiele an allen hängenden oder schräg gestellten Zweigen, wie auch die Umdrehung der Blätter der Alstroemerien und des Allium ursinum sind bekannte Beispiele für regelmäßig auftretende Orientierungstorsionen.
Unter den dorsiventralen Organen verdienen die mit Gelenkpolstern versehenen Laubblätter wieder besonders hervorgehoben zu werden, weil sie auch im ausgewachsenen Zustande durch geotropische Variationsbewegungen ihre Lage verändern können.
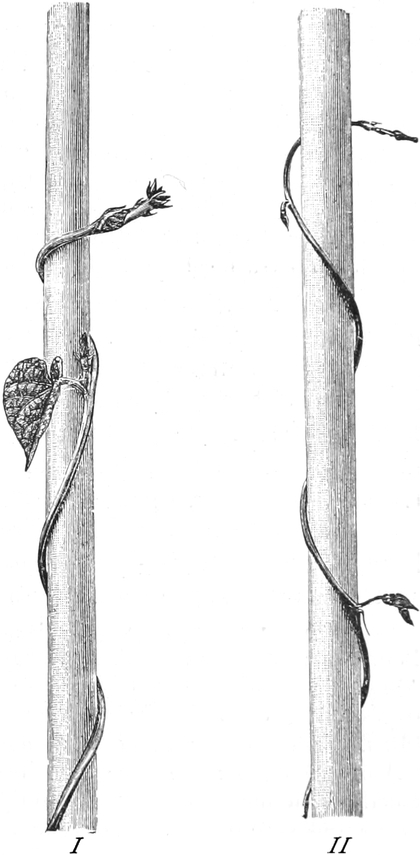
Fig. 282. I Linkswindender Sproß von Pharbitis. II Rechtswindender Sproß von Myrsiphyllum asparagoides. Nach NOLL.
Die Schlingpflanzen[261]. Die Schlingpflanzen, die in den verschiedensten Pflanzenfamilien auftreten, besitzen Sprosse, die sich nicht aus eigener Kraft zu halten vermögen, aber dennoch aufwärts wachsen. Die Stengel und Stämme anderer Pflanzen, die sich mit Aufwand großer Mengen von assimilierter Substanz (Holz, Sklerenchym) zu aufrechtem Wuchs gefestigt haben, werden von den Schlingpflanzen benutzt, um an ihnen die eigenen Assimilationsorgane in freier Luft und in vollem Licht auszubreiten. Die Ausnutzung fremder Assimilationsgerüste haben die Schlingpflanzen mit anderen Kletterpflanzen, wie den Rankenpflanzen und Wurzelkletterern, gemein. Sie erreichen ihr Ziel aber nicht durch die Ausbildung seitlicher Haftorgane, sondern durch schlangenartiges Winden ihrer Hauptachsen an den Stützen hinauf. Die ersten aus dem Samen oder aus unterirdischen Reservestoffbehältern sich entwickelnden Stengelglieder der Schlingpflanzen stehen in der Regel noch aufrecht. Bei weiterem Wachstum krümmt sich das freie Ende aber aktiv seitwärts über und nimmt eine mehr oder weniger schräge oder wagrechte Stellung an. Zugleich beginnt der so geneigte Gipfel wie ein Uhrzeiger sich im Kreise zu drehen, vgl. S. 297. Diese Bewegung dauert von dem Moment ihres Entstehens an so lange, als der betreffende Sproß im Wachstum verbleibt, und sie behält in der Regel eine bestimmte Richtung dauernd bei; bei der Mehrzahl der Windepflanzen erfolgt die kreisende Bewegung, von oben her gesehen, in der Richtung entgegengesetzt der Uhrzeigerbewegung (nach links, wie man gewöhnlich zu sagen pflegt); in der Richtung des Uhrzeigers, also nach rechts, kreist z. B. der Hopfen und das Geißblatt; verschiedene Winderichtung bei verschiedenen Individuen und selbst Wechsel der Richtung beim Einzelindividuum hat man z. B. bei Polygonum Convolvulus und Loasa lateritia beobachtet. Die linkskreisenden Pflanzen winden auch links (Fig. 282 I), d. h. die „Wendeltreppe“, die sie bilden, steigt (von außen gesehen) von links unten nach rechts oben, von oben gesehen entgegen dem Uhrzeiger; die rechtskreisenden Pflanzen winden auch rechts (Fig. 282 II). Es besteht also eine enge Beziehung zwischen kreisender Bewegung und Winden.
Mit dem Beginn der kreisenden Bewegung ist noch nicht ohne weiteres eine Windebewegung gegeben; diese beginnt erst dann, wenn wir dem Sproß eine mehr oder minder lotrechte, nicht zu dicke Stütze bieten. Eine solche wird dann in lockeren und anfangs sehr flachen Schraubenlinien umwunden, die sich erst allmählich steiler aufrichten. Die Aufrichtung erfolgt durch negativen Geotropismus und geht bei nachträglicher Entfernung der Stütze — unter sonst geeigneten Umständen — in eine völlige Geradestreckung der Schraubenwindung über, wobei der Stengel dann gedreht erscheint; wird die Stütze nicht entfernt, so tritt nur ein Engerwerden der Windungen und demnach ein Druck auf die Stütze ein. Durch kreisende Bewegung und negativen Geotropismus kommt also die Windebewegung zustande. Die Stütze spielt insofern eine Rolle, als sie die sonst unvermeidliche Geradestreckung unmöglich macht. Sie muß mehr oder minder lotrecht stehen, weil sie sonst von dem überhängenden Gipfel gar nicht dauernd erfaßt werden kann.
Erleichtert wird das Winden noch dadurch, daß die Sprosse der Windepflanzen zuerst die Internodien stark strecken und ihre Blätter unentwickelt lassen. Sie ähneln hierin den etiolierten Pflanzen, und sie erreichen durch die späte Entfaltung der Blätter das regelmäßige Kreisen des Gipfels, das andernfalls durch Anstoßen von Blättern an die Stütze unmöglich gemacht würde. Der feste Halt an der Stütze wird vielfach durch Rauheit der Stengeloberfläche, durch Haare, Borsten, Riefen noch erhöht. Auch Torsionen, auf deren Ursache hier nicht eingegangen werden kann, wirken oft im gleichen Sinne.
Änderung der geotropischen Ruhelage. Die Ruhelage, die ein Organ nach einer bestimmten geotropischen Reizung einnimmt, ist nicht ein für allemal gegeben; vielmehr ändert sie sich durch innere und äußere Einflüsse. Man spricht von einer „Umstimmung“ der geotropischen Reizbarkeit. Eine gewisse „Stimmung“ der Pflanze betrachtet man demnach als die normale, und die bei ihr erfolgenden Reaktionen haben zur Einteilung in orthotrope und plagiotrope, in positiv und negativ geotropische Organe geführt.
Von den äußeren Faktoren, die Einfluß auf die geotropische Stimmung haben, nennen wir hier Licht und Temperatur, die Zentrifugalkraft, den Sauerstoff; von inneren die Entwicklungsphase, in der sich ein Organ befindet.
Die Veränderung der geotropischen Reaktion durch die Beleuchtung hat eine große Bedeutung für die Tiefenlage der Rhizome. Wenn ein Rhizom von Adoxa, etwa an einem Abhang wachsend, mit der Spitze ins Licht gerät, geht sein bisheriger Transversalgeotropismus sofort in positiven Geotropismus über, der das Rhizom wieder in den Erdboden führt. Indessen genügt offenbar auch der Lichteinfluß auf den oberirdischen Sproßteil oft schon, um ein unterirdisches Rhizom zu dirigieren. Wird das Rhizom von Polygonatum zu hoch im Boden eingepflanzt, doch immer noch so, daß es ganz von Erde bedeckt und verdunkelt ist, so wendet sich der Neuzuwachs schräg nach unten; wird es aber zu tief gesetzt, so wendet er sich nach oben (Fig. 283); bei richtiger Tiefenlage verhält er sich dagegen transversal-geotropisch. — Auch auf den Geotropismus der Seitenwurzeln wirkt das Licht sehr stark ein: bei Beleuchtung nähern sich die Seitenwurzeln erster Ordnung viel mehr der orthotropen Ruhelage als im Dunkeln.
Eine Wirkung der Temperatur läßt sich an den Stengeln mancher Frühjahrspflanzen beobachten. Bei Temperaturen in der Nähe von 0° legen sich diese vielfach dem Boden an, um sich erst bei höherer Temperatur orthotrop aufzurichten. — Durch Sauerstoffmangel werden manche Wurzeln und Rhizome negativ geotropisch und gelangen so in Regionen, wo ihnen mehr Sauerstoff zur Verfügung steht.
Umstimmungen durch innere Ursachen sehen wir z. B an Rhizomen, die in einem gewissen Entwicklungsstadium ihre diageotrope Lage aufgeben und orthotrop werden, oder an Blütenstielen, die nach der Befruchtung positiv geotropisch werden[262]. So werden die Früchte von Trifolium subterraneum und von Arachis hypogaea in die Erde eingegraben. — Auch am windenden Stengel haben wir eine Umstimmung kennen gelernt; er windet in der Jugend noch nicht.
Geotropismus als Reizerscheinung. Der Entdecker des Geotropismus, KNIGHT, suchte die geotropischen Bewegungen in rein mechanischer Weise zu erklären, was insbesondere für die positiv geotropischen Organe nicht schwierig erschien. Er stellte sich vor, daß diese einfach dem Zug der Schwere folgend in ihre Ruhelage gelangen. Später hat noch HOFMEISTER ähnliche Ansichten vertreten. Die richtige Auffassung, daß wir es mit komplizierten Reizbewegungen zu tun haben, bei denen die Erdschwere nur die Rolle des auslösenden Faktors spielt, verdankt man vor allem DUTROCHET, FRANK und SACHS. Schon die einzige Tatsache, daß die Wurzel auch gegen den Widerstand von Quecksilber eine geotropische Krümmung auszuführen vermag, hätte genügen müssen, um jede rein mechanische Auffassung zu widerlegen.
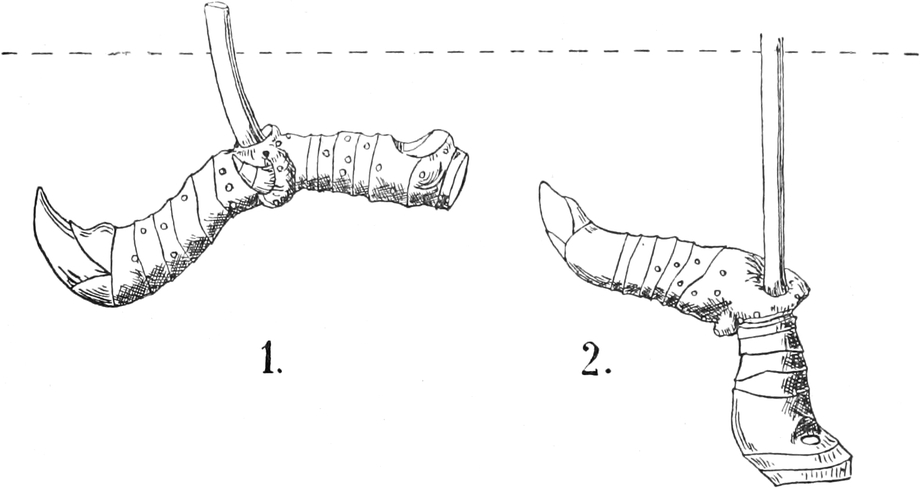
Fig. 283. Rhizome von Polygonatum. Nach RAUNKIAER. Die gestrichelte Linie stellt die Erdoberfläche vor. Die Blütenstengel sind abgeschnitten. Rhizom 1 war zu hoch eingepflanzt; seine Verlängerung geht abwärts (nur die Endknospe, aus der sich wieder ein Blütenstengel bildet, ist aufwärts gerichtet). Rhizom 2 war aufrecht und zu tief eingepflanzt; sein Zuwachs geht schräg nach oben.
Erst in neuerer Zeit hat man den Versuch gemacht, zu ergründen, welches die primäre Wirkung der Schwerkraft in der Pflanze ist[263]. Es kann keinem Zweifel unterliegen, daß es sich da um eine Druckwirkung handeln muß. Die Ersetzbarkeit der Schwerkraft durch Zentrifugalkraft spricht schon dafür. — Weiter aber zeigt sich, daß dieser Druck bei orthotropen Organen nur so weit zur Geltung kommt, als er senkrecht zur Längsachse steht; schief angreifende Schwerkraft wirkt also nur im Verhältnis ihrer senkrechten Komponente. („Sinusgesetz“, weil die Größe dieser Komponente durch den Sinus des Einfallwinkels bestimmt wird.) Zwei unter einem Winkel angreifende Kräfte (Schwerkraft und Zentrifugalkraft) treten nach dem Parallelogramm der Kräfte zu einer Resultante zusammen (Resultantengesetz). — Endlich wissen wir, daß der Druck durchaus im Innern der Zellen wirken muß und in keiner Weise ersetzbar ist durch von außen kommende Wirkungen.
F. NOLL hat zuerst die Vorstellung entwickelt, daß irgendwelche Zellteile, die spezifisch schwerer sein müssen als das sie umgehende sensible Plasma, unter dem Einfluß der Schwerkraft einen einseitigen Druck auf dieses ausüben, worauf dann das Plasma die Wachstumsvorgänge im Sinne der Schwererichtung lenkt. NĚMEC und HABERLANDT haben dann die Vermutung ausgesprochen, daß solche spezifisch schwereren Körperchen („Statolithen“) in gewissen Stärkekörnern zu suchen seien, die relativ rasche Fallbewegungen in der Zelle auszuführen vermögen und sich deshalb immer der nach unten schauenden Zellwand anlegen. Sie finden diese Stärkekörner bei den Stengeln in der Stärkescheide (S. 81), bei den Wurzeln in den Zellen der Haube. Sie nehmen an, daß nur in den mit solchen Stärkekörnern versehenen Teilen ein Schwerereiz direkt von Wirkung sei, daß er aber von diesen Punkten aus weiter geleitet werde. In der Tat hat man nachgewiesen, daß in der Wurzel vorzugsweise die Spitze den Schwerereiz aufnimmt. Nach Versuchen von STAHL und ZOLLIKOFER gelingt es in manchen Fällen, die Statolithenstärke zu lösen und damit auch den Geotropismus zum Verschwinden zu bringen, während Wachstum und phototropische Reaktionsbefähigung fortdauern. Damit ist gezeigt, daß die Stärkekörner hier für die Reizaufnahme nötig sind; aber freilich die leichte Beweglichkeit dieser Körner, die die Hypothese so eindrucksvoll gemacht hat, ist nach gewissen physiologischen Erfahrungen für die Reizperzeption ganz gleichgültig. Auch ist in anderen Fällen (Moosrhizoiden) nach Verschwinden der Stärke noch Geoperzeption möglich. Da müssen also, wie ja auch bei Pilzen, andere Statolithen tätig sein.
Im allgemeinen können wir auf geotropische Reizbarkeit eines Organs nur aus der eintretenden Krümmung schließen. In einzelnen Fällen aber läßt sich auch ohne solche Reaktion eine geotropische Reizbarkeit erkennen. So ist z. B. bei manchen Graskeimlingen, die ein wohl ausgebildetes Internodium unterhalb des Scheidenblattes besitzen (Paniceen), das Scheidenblatt in einem gewissen Moment ausgewachsen und deshalb nicht mehr geotropisch krümmungsfähig; daß es aber noch geotropisch reizbar ist, erkennt man daraus, daß nach einseitiger Einwirkung der Schwerkraft auf diese Scheide das Internodium sich krümmt, obwohl es selbst nicht geotropisch reizbar ist. Der geotropische Reiz muß ihm also von der Scheide her zugeleitet worden sein. Bei anderen Graskeimlingen (Poaeoideen) hat man bemerkt, daß die Spitze des Scheidenblattes viel stärker geotropisch reizbar ist als die Zone maximalen Wachstums, und eine ähnliche Abnahme der geotropischen Sensibilität von der Spitze nach der Basis zu liegt auch bei Wurzeln vor. Man kann nun mit Hilfe eines besonderen Apparats bei solchen Objekten Spitze und Wachstumszone durch Fliehkräfte entgegengesetzt geotropisch reizen und bemerkt dann, daß die Wachstumszone sich im Sinne der gereizten Spitze krümmt. Es findet also eine Reizleitung von der Spitze basalwärts statt, und der geleitete Reiz überwindet den in der Wachstumszone direkt induzierten vollkommen. — Es lassen sich also in solchen Fällen deutlich drei Prozesse trennen: Reizaufnahme (Perzeption), Reizleitung und Reizreaktion. Ein Organ kann perzipieren, ohne selbst zu reagieren, und umgekehrt kann auch ein Organ, das selbst nicht perzipiert, geotropisch reagieren. Wir haben allen Grund anzunehmen, daß diese drei Teile des Reizprozesses auch da unterschieden werden müssen, wo sie nicht so scharf sich trennen lassen.
Wir entnehmen schon diesen Ausführungen, daß der Grad der geotropischen Krümmung und die Geschwindigkeit, mit der sie eintritt, keineswegs ein Maßstab für die Größe der Reizung ist, da sie weitgehend von der Wachstumsbefähigung abhängen. Die Größe der geotropischen Reizung hängt zunächst einmal von der spezifischen Empfindlichkeit der gereizten Organe, außerdem aber auch von der „Reizmenge“ ab, die es getroffen hat. Die Größe der Reizung eines gegebenen Organs ist direkt der „Reizmenge“ proportional. Unter Reizmenge aber versteht man das Produkt aus der Intensität des Reizes und der Dauer seiner Einwirkung. Es ist also für den Erfolg gleichgültig, ob wir eine hohe Fliehkraft für kurze Zeit oder eine geringe entsprechend längere Zeit einwirken lassen.
Diese Gesetzmäßigkeit, das „Reizmengengesetz“[264], das enge Beziehungen zu den früher erwähnten Gesetzmäßigkeiten, dem Sinusgesetz und dem Resultantengesetz aufweist, gilt freilich nur innerhalb gewisser Grenzen. Es hat sich gezeigt, daß ein orthotropes Organ, horizontal gelegt, unter konstanten Außenbedingungen nach einer ganz bestimmten Zeit anfängt, sich zu krümmen. Die Zeit, die vom Beginn der Reizung bis zum Beginn der Reaktion verstreicht, nennt man die Reaktionszeit. Es ist aber zur Erzielung einer geotropischen Reaktion nicht nötig, ein Organ während der ganzen Reaktionszeit zu reizen. Es genügt vielmehr eine sehr viel kürzere Zeit, um an dem weiterhin senkrecht gestellten Organ durch Nachwirkung eine geotropische Krümmung zu erhalten. Die minimale Reizzeit, nach der noch eine gerade sichtbare Krümmung erfolgt, nennt man „Präsentationszeit“. Nur für Reize, die solange oder etwas länger währen als die Präsentationszeit, gilt zunächst einmal das Reizmengengesetz; die Präsentationszeit ist also umgekehrt proportional der Reizintensität. Größere Reizmengen haben keine entsprechende Steigerung der geotropischen Krümmung zur Folge.
Wie andere Eigenschaften der Pflanze ist auch die Reaktionszeit und die Präsentationszeit weitgehenden Schwankungen unterworfen, so daß man bei statistischer Untersuchung typische Variationskurven erhält. TRÖNDLE fand als mittlere Reaktionszeit für Hafersprosse 32 Min., für Kressewurzeln 21 Min. Einzelne Haferkeime reagierten schon nach weniger als 14 Min., andere erst nach mehr als 49 Min. Bei den meisten Pflanzen sind die Reaktionszeiten aber größer. Die Präsentationszeiten sind häufig zu 2, 3 bis 10 und mehr Min. gefunden worden.
Reize unter Präsentationsdauer bleiben indes nicht wirkungslos. Bei Wiederholung summieren sie sich und führen schließlich zu einer Krümmung, wenn die Summe der Einzelreize die Präsentationszeit erreicht, und wenn die Pausen zwischen den Einzelreizen nicht zu groß waren. Eine untere Grenze für die Dauer des Einzelreizes konnte bis jetzt nicht gefunden werden.
2. Phototropismus [Heliotropismus][265].
Phototropische Krümmungen kommen bei einseitigem Lichteinfall zustande. Man beobachtet sie leicht bei Pflanzen, die am Waldrande wachsen oder die im Zimmer gehalten werden. Die Stengel der im Zimmer aufgestellten Pflanzen wachsen nicht wie im Freien bei allseitiger Beleuchtung aufrecht, sondern sind dem nächsten Fenster zugeneigt; sie sind orthotrop und positiv phototropisch. Im Gegensatz zu diesen Teilen findet man ihre Blattflächen senkrecht zu den einfallenden Lichtstrahlen gestellt, um möglichst viel Licht aufzufangen; die Blattflächen sind transversal phototropisch (lichtfangend). Weniger häufig hat man Gelegenheit, negativen Phototropismus, also ein Wegwachsen von der Lichtquelle, zu sehen. — In Fig. 284 sind die verschiedenartigen phototropischen Krümmungen, die an einer Wasserkultur des weißen Senfes bei einseitiger Beleuchtung eintreten, dargestellt.
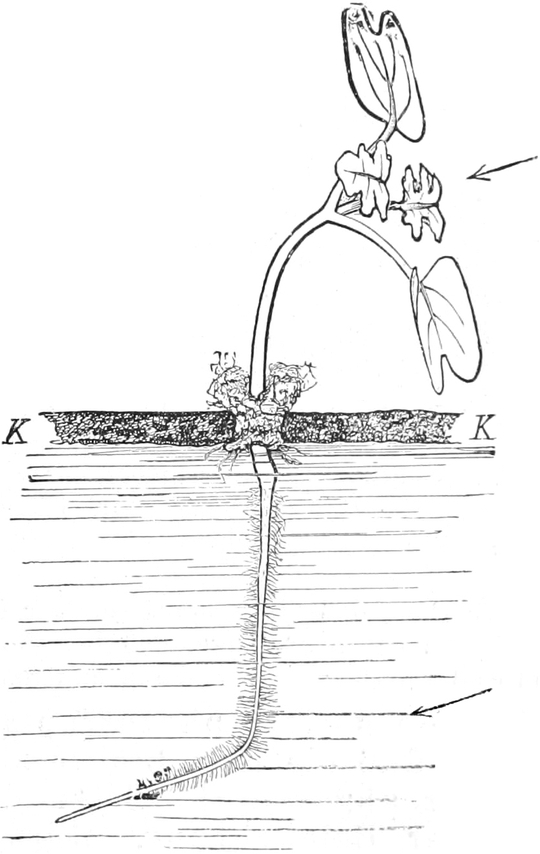
Fig. 284. Keimling des weißen Senfs in Wasserkultur, ursprünglich allseitig, dann einseitig beleuchtet. Stengel dem Lichte zugekehrt, die Wurzel abgewendet, die Blattflächen senkrecht zum Lichte ausgebreitet. K K Korkplatte (Schwimmer). Nach NOLL.
Phototropismus ist im Pflanzenreich weit verbreitet. Am häufigsten kommt der positive Phototropismus zur Beobachtung, er bildet die Regel bei den oberirdischen Vegetationsachsen. Viel seltener zeigt sich der negative Phototropismus, z. B. bei Luftwurzeln, zumal Kletterwurzeln (Ficus stipulata, Begonia scandens u. a.), beim hypokotylen Stammglied der keimenden Mistel, bei manchen, aber nicht allen Erdwurzeln (Sinapis, Helianthus), Ranken (zumal den mit Haftscheiben versehenen), am Stengel einzelner Kletterpflanzen. Haftwurzeln und Haftranken von Kletterpflanzen haben, wie auch die Keimwurzel der Mistel, von ihrem negativen Phototropismus den Vorteil, der dunklen Unterlage zugeführt zu werden. Wie später (S. 310) zu zeigen sein wird, kann die phototropische Reaktionsweise abgeändert werden, also z. B. ein sonst positiv reagierendes Organ zu negativen Krümmungen veranlaßt werden.
Zur genaueren Beobachtung der phototropischen Erscheinungen ist es notwendig, das einseitig einfallende zerstreute Tageslicht durch eine enger begrenzte Lichtquelle zu ersetzen. Dann zeigt sich vor allem, daß, wie bei den topophototaktischen Bewegungen, die Richtung des einfallenden Lichtes maßgebend ist für die phototropische Ruhelage. Jede Änderung der Strahlenrichtung hat auch eine Stellungsänderung der phototropischen Organe zur Folge. Das Gipfelende mancher positiv phototropischen Organe findet man völlig in der Richtung der Strahlen eingestellt.
Mit welcher Genauigkeit dies bei einzelnen Pflanzen geschieht, zeigt ein Versuch mit dem kleinen Pilze Pilobolus crystallinus. Seine Sporangienträger kommen aus feucht gehaltenem Pferde- und Kuhmist nach kurzer Zeit zahlreich hervor; sie sind positiv phototropisch und richten alle das schwarze Sporangium der Lichtquelle zu. Zur Zeit der Reife wird das Sporenköpfchen mit großer Gewalt geradeaus fortgeschleudert. Hat man nun das Licht nur durch ein kleines verglastes Rundfenster seitlich in die Versuchskammer einfallen lassen, so findet man die klebrigen Sporangien alle dicht um das Zentrum der kleinen Lichtscheibe angeschossen, ein Zeichen, daß die Sporangienträger genau dorthin gerichtet waren (Fig. 285).
Es ist anzunehmen, daß bei gleichzeitigem Einfall zweier oder mehrerer Strahlenbüschel verschiedener Richtung und Stärke das Resultantengesetz gilt (vgl. S. 305).
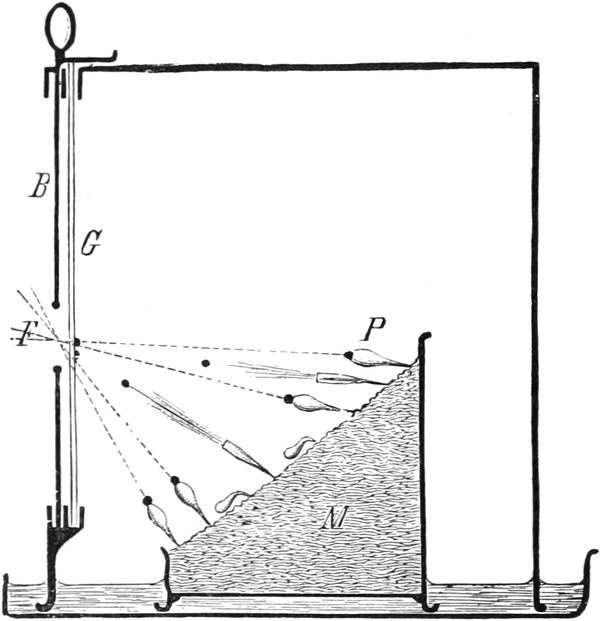
Fig. 285. Pilobolus crystallinus (P), seine Sporangien nach der Lichtscheibe abschießend. G Glasscheibe. B Blechschieber mit rundem Fenster F. M Kulturkasten mit Pferdemist gefüllt. Vgl. den Text. Nach NOLL.
Die positiv phototropischen Krümmungen kommen dadurch zustande, daß die dem Lichte zugewandte Seite langsamer, die vom Lichte abgewandte Seite dagegen stärker wächst als bei allseitiger Beleuchtung. Beim negativen Phototropismus besteht die umgekehrte Wachstumsverteilung. Im allgemeinen treten Krümmungen nur in der Strecke auf, die noch im Wachsen begriffen ist, und der Ort des lebhaftesten Wachstums pflegt zugleich derjenige der schärfsten Krümmungen zu sein.
Der Verlauf der phototropischen Krümmung entspricht vollkommen dem der geotropischen (S. 301). — Man hat früher versucht, das geförderte Wachstum der Schattenseite bei positiver phototropischer Reaktion durch beginnendes Etiolement, das gehemmte der Lichtseite durch die verzögernde Wirkung zu erklären, die das Licht auch auf das geradlinige Wachstum der Stengel ausüben sollte (S. 251). Diese Vorstellung, die lange Zeit verlassen war, ist neuerdings vor allem durch BLAAUW[266] in modifizierter Form wieder aufgenommen worden. Nach ihm sollen die Veränderungen des Längenwachstums, die man nach einer Änderung der Beleuchtungsstärke beobachtet, wenn sie an verschiedenen Flanken eines orthotropen Organs ungleich sind, direkt zu einer phototropischen Krümmung führen. Diese Veränderungen sind nicht bei allen Pflanzen gleich (vgl. S. 252) und bestehen bald in einer primären Wachstumsförderung, bald in einer Hemmung. So sucht BLAAUW, indem er ferner auch die verschiedene Durchsichtigkeit der Organe und die Lichtbrechung im Innern berücksichtigt, die bald positive, bald negative phototropische Reaktion oder auch das Ausbleiben jeglichen Phototropismus verständlich zu machen. Es muß anerkannt werden, daß in neuerer Zeit immer mehr ein weitgehender Parallelismus zwischen der Lichtwachstumsreaktion und dem Phototropismus festgestellt werden konnte. Daneben muß aber auch heute noch betont werden, daß manche Lücken in der Beweisführung der BLAAUWschen Theorie bestehen und daß diese bei der Übertragung auf andere Reizerscheinungen (Geotropismus und noch mehr Haptotropismus) großen Schwierigkeiten begegnet.
In einzelnen Fällen hat man[267] auch an Organen, deren Längenwachstum abgeschlossen ist, noch phototropische Krümmungen festgestellt. Dies trifft einmal für mehrjährige Bäume zu, bei denen wahrscheinlich das Kambium eine große Bedeutung für die beobachteten Krümmungen hat, andererseits finden sie sich auch an Knoten, wie z. B. denen der Gramineen und Commelinaceen, wo durch Licht allein oder nur bei gleichzeitiger Schwereeinwirkung das Längenwachstum wieder aufgenommen wird.
Hat sich ein Organ durch eine phototropische Krümmung in die Richtung des Lichtes eingestellt, so ist es auch allseitig gleich stark beleuchtet und befindet sich in seiner phototropischen Ruhelage. Sorgt man, ohne den Lichteinfall oder die Lichtintensität zu ändern, dafür, daß die Pflanze durch ein Uhrwerk (Klinostat) in dauernde Rotation um ihre vertikale Längsachse versetzt wird, so heben sich die auf verschiedene Seiten orthotroper Organe nacheinander einwirkenden phototropischen Reize auf; es bleiben also die phototropischen Krümmungen aus.
SACHS hat seiner Zeit die Vorstellung entwickelt, daß beim Phototropismus — ähnlich wie beim Geotropismus die Richtung der Schwerkraft — die Lichtrichtung maßgebend sei. Eine große Anzahl von Tatsachen spricht heute dafür, daß die phototropische Reizung vielmehr durch ungleiche Helligkeit an verschiedenen Stellen des phototropisch-empfindlichen Organs zustande kommt[268].
Wenn auch in einzelligen Schläuchen von einer bestimmten Lichtrichtung gesprochen werden kann, so dürfte das doch für vielzellige Gewebe, mit ungleich brechendem Zellinhalt und reichlichen lichtführenden Interzellularen bestimmt nicht möglich sein. Es lassen sich aber auch experimentell Bedingungen schaffen, wo zweifellos die phototropische Krümmung nicht in der Richtung der Strahlen verläuft. So z. B. wenn man Avena-Koleoptilen halbseitig von oben beleuchtet: da tritt die Krümmung senkrecht zu der Strahlenrichtung nach der beleuchteten Seite zu auf: oder wenn man Avena-Koleoptilen von innen her beleuchtet: die Krümmung erfolgt genau in entgegengesetzter Richtung wie die Strahlen; es ist also gleichgültig, ob die helle Hälfte der Koleoptile das Licht von außen oder von innen erhält.
Phototropische Krümmungen können im Licht aller Wellenlängen, die das sichtbare Spektrum bilden, ausgeführt werden. Bei gleicher Energie wirken aber die blauen und violetten Strahlen ungleich stärker phototropisch, wie sie ja auch phototaktisch sich wirksamer erweisen.
Der Transversalphototropismus findet sich bei Blättern und blattartigen Assimilationsorganen (wie Farnprothallien, dem Thallus von Lebermoosen, Algen) also bei dorsiventralen Gebilden. Bei diesen Organen überwiegt der transversale Phototropismus alle anderen Bewegungsreaktionen. Solche Organe stellen sich also im allgemeinen senkrecht zu dem hellsten diffusen Licht, das sie während ihrer Entwicklung trifft; bei dieser Einstellung führen einfache Krümmungen meist nicht mehr zum Ziel, es kommt zu Torsionen der Blätter oder der Internodien.
In sehr hellem, direktem Licht kann die transversale Stellung der Blattflächen durch andere, den intensiven Lichtstrahlen ausweichende Lagen ersetzt werden. Es hat also das Laubblatt ähnlich wie die Chlorophyllplatte von Mesocarpus die Fähigkeit, eine Profil- oder eine Flächenstellung einzunehmen und dadurch die Menge des einfallenden Lichtes zu regulieren. Die Blätter unserer Lactuca Scariola und des nordamerikanischen Silphium laciniatum, die blattartigen Sprosse mancher Kakteen, stellen sich auf sehr sonnigem Standort in die Meridianebene ein („Kompaßpflanzen“), so daß nur die Morgen- und Abendsonne ihre Fläche trifft, während die heißen Strahlen der Mittagssonne sie nur streifen.
Eine Reihe von Laubblättern besitzt an der Basis des Stieles bzw. auch am Grunde sekundärer und tertiärer Ausgliederungen Blattpolster (Fig. 134, 278), die Variationsbewegungen auszuführen vermögen. Dadurch sind diese Blätter in den Stand gesetzt, zeitlebens ihre Lage zu ändern und in jedem Moment die Stellung einzunehmen, die ihnen den optimalen Lichtgenuß verschafft. Sie erreichen also nicht eine „fixe“ Lichtlage, die durch das stärkste während ihrer Entwicklung einfallende diffuse Licht bedingt ist, sondern sie nehmen bald Flächen-, bald Profilstellung zu dem gerade herrschenden Licht ein.
Stimmungswechsel[269]. Ein bestimmter Pflanzenteil reagiert nicht immer in gleicher Weise auf ein und denselben Reiz; vielmehr kann die Reaktionsweise durch das Alter oder durch äußere Einflüsse geändert werden. Man spricht in diesem Sinn auch hier von einer „Stimmung“ und einer „Umstimmung“ der Pflanze.
So sind die Blütenstiele der Linaria Cymbalaria zunächst positiv phototropisch; nach der Bestäubung werden sie aber bei gleichzeitiger starker Verlängerung (S. 244) negativ phototropisch und führen die jungen Samenkapseln zur Aussaat in Mauer- und Gesteinsspalten ein.
Von umstimmenden Außenfaktoren ist vor allen Dingen die Lichtmenge selbst zu nennen. Kleine einseitig auf Avena einfallende Lichtmengen führen ausschließlich zu positiv phototropischer Krümmung; größere Mengen bewirken eine schwächere positive Krümmung, der bald eine negative folgt; noch größere Mengen bedingen eine rein negative Reaktion. Bei weiterem Anwachsen der Reizmenge bemerkt man zunächst wieder positive und späterhin mindestens abgeschwächt positive, wenn nicht negative Reaktion. Inwieweit auch die Intensität der Beleuchtung die Ergebnisse beeinflußt, kann hier nicht besprochen werden.
Der Phototropismus ist gerade wie der Geotropismus eine Reizerscheinung[270]. Auch bei ihm lassen sich Reizaufnahme, Reizleitung und Reizreaktion unterscheiden. Auch bei ihm gibt es eine Präsentationszeit und eine Reaktionszeit. Ferner ist die Gültigkeit des Reizmengengesetzes sowohl bei der positiven wie bei der negativen Reaktion von Avena nachgewiesen, während es bei der nach noch stärkerer Beleuchtung auftretenden abermaligen positiven Reaktion nicht zutrifft. Weiter gilt ein Gesetz, das freilich nur einen Spezialfall des Reizmengengesetzes bildet, das aber deshalb von großer Bedeutung ist, weil es zuerst für die Lichtempfindung im menschlichen Auge nachgewiesen wurde. Dieses sog. TALBOTsche Gesetz[271] sagt aus, daß unterschwellige einseitige Lichtreize sich summieren können und daß die Summe der in den Einzelreizen der Pflanze zugeführten Lichtmengen genau den gleichen Effekt hat, wie wenn sie auf einmal, ohne Unterbrechungen gewirkt hätte. Vorausgesetzt ist dabei nur, daß die Einzelreize von nicht zu langen Verdunkelungen getrennt sind, da sonst die Wirkung des ersten abgeklungen ist, wenn der zweite einsetzt.
Lokalisation der phototropischen Reizung. Sehr häufig erfolgt die Aufnahme des Lichtreizes an derselben Stelle, an der auch die Bewegung ausgeführt wird. Bei gewissen Laubblättern aber ist die Lamina imstande, einen phototropischen Reiz zu perzipieren, ohne daß sie selbst auch die entsprechende Bewegung auszuführen vermag; diese erfolgt vielmehr erst, wenn der Reiz weiter geleitet ist, im Blattstiel. Der Blattstiel kann freilich auch auf direkte Reizung reagieren. Noch auffallendere Verhältnisse treffen wir bei den Keimlingen gewisser Gramineen an; bei manchen Paniceen ist nur die Spitze des sog. Kotyledons phototropisch reizbar, und nur das abwärts auf ihn folgende hypokotyle Glied ist phototropisch krümmungsfähig. Hier haben wir also eine ausgesprochene Trennung in Perzeptionsorgan und Bewegungsorgan; die Ähnlichkeit mit entsprechenden Vorkommnissen beim Geotropismus ist somit sehr auffallend. Aber auch an die Verhältnisse im Tierreich erinnert diese Differenzierung in Perzeptions- und Bewegungsorgan. Ein wesentlicher Unterschied liegt aber in der Art der Reiztransmission[272]. Denn es fehlen in der Pflanze spezifisch reizleitende Zellen („Nerven“) völlig, und der Reiz wird von Zelle zu Zelle weitergegeben, ja er kann sogar nach Unterbrechung des organischen Zusammenhanges durch seitliche Einschnitte auch dann weitergeleitet werden, wenn in den Einschnitt ein Blättchen von Gelatine gelegt wird; dagegen hört die Leitung auf, wenn in gleicher Weise ein Stanniolblättchen angebracht wurde. Schneidet man bei Gramineenkeimlingen die Spitze ab und setzt sie wieder dem Stumpf auf, so kann ein Reiz von der Spitze aus über die Wundstelle weg zur Basis geleitet werden; der Versuch gelingt selbst dann, wenn man die Spitze einer anderen Grasart dem Stumpf aufgelegt hat. Somit muß wohl ein diffundierender Stoff bei der Reizleitung eine Rolle spielen, und es liegt nahe anzunehmen, daß derselbe Stoff die Leitung besorgt, der bei der phototropischen Reizung entsteht. Mit anderen Worten, man muß sich vorstellen, daß die Pflanze über Stoffe verfügt, die unter dem Einfluß des Lichtes entstehen oder vergehen können und deren ungleiche Verteilung Phototropismus bewirkt. Warum deren Leitung aber nur in der Längsrichtung der Organe und nur basipetal erfolgt, ist noch ganz ungeklärt.
3. Chemotropismus[273].
Chemotropisch nennt man Richtungsbewegungen, die durch ungleichmäßige Verteilung von gelösten oder gasförmigen Stoffen in der Umgebung der Pflanze veranlaßt werden. Bei Pilzen und bei Pollenschläuchen sind solche Bewegungen konstatiert, die den Organismus in eine bestimmte Konzentration des betreffenden Stoffes, wohl die optimale, hineinführen. Dementsprechend fallen diese Bewegungen bei dem gleichen Organismus und beim gleichen Reizstoff bald positiv, bald negativ aus; positiv, wenn es gilt, eine höhere Konzentration zu gewinnen; negativ im entgegengesetzten Falle. — Als Reizstoffe kommen für die Pollenschläuche Zucker und Proteïne in Betracht; bei Pilzen außer diesen noch Pepton, Asparagin, Ammoniumverbindungen und Phosphate. Es fehlt auch nicht an Stoffen, die schon in sehr schwacher Konzentration stets nur abstoßende Wirkung ausüben, so z. B. freie Säuren und bei Pilzen Stoffwechselprodukte unbekannter Natur, die aus den Zellen heraus diffundieren. Auch bei Wurzeln ist eine chemotropische Reizbarkeit nachgewiesen, ohne daß man sagen könnte, diese spiele eine große Rolle in ihrem Leben.
Bei den bisher angeführten Beispielen von Chemotropismus waren die Reizstoffe feste Körper, die in Wasser gelöst wurden. Wenn dagegen die Pflanze durch ungleich im Raume verteilten Wasserdampf oder Gase zu einer Richtungsbewegung veranlaßt wird, so hat man dieser einen besonderen Namen zu geben für nötig befunden, obwohl im Prinzip kein Unterschied gegenüber den gelösten Substanzen besteht. Reizbewegungen durch Feuchtigkeitsdifferenzen nennt man hydrotropische, durch Gasdifferenzen bedingte aërotropische. Aërotropismus ist bei Pollenschläuchen, Wurzeln und Sprossen nachgewiesen, Hydrotropismus bei Wurzeln und Schimmelpilzen; positiv hydrotropisch sind z. B. die Wurzeln, die mit Hilfe dieser Reaktionsweise die feuchten Stellen in der Erde auffinden, negativ hydrotropisch verhalten sich z. B. Sporangienträger der Mucorineen, die aus dem feuchten Substrat herauswachsen. Diese Reaktionen können so energisch sein, daß sie eventuell andersartige (z. B. geotropische) Reize überwinden.
4. Traumatotropismus[274].
Eine einseitige Verwundung eines Pflanzenteils wird leicht zu einer Wachstumshemmung an der Wundstelle führen, so daß eine Krümmung entsteht, die auf ihrer Konkavseite die Wunde trägt. Eine solche Krümmung wäre keine tropistische Reizkrümmung. Unter Traumatotropismus versteht man demnach eine ganz andere Erscheinung, die vor allem bei Wurzeln leicht zu beobachten ist. Macht man an ihrem Vegetationspunkt einseitig einen Einschnitt, oder ätzt oder sengt man ihn einseitig an, so tritt in einiger Entfernung in der darüber liegenden Wachstumszone eine Krümmung ein, die man negativ traumatotropisch nennt, weil durch sie die Spitze der Wurzel von dem schädigenden Agens entfernt wird. Die senkrecht oberhalb der Wunde gelegene Stelle der Wachstumszone wächst also hier stärker als die Gegenseite. Das besondere Interesse dieses Tropismus liegt demnach darin, daß wir eine scharfe Trennung zwischen dem Ort der Reizaufnahme und dem Ort der Reizreaktion und dementsprechend auch eine ausgesprochene Reizleitung feststellen können.
Auch bei oberirdischen Organen ist gelegentlich ein negativer Traumatotropismus nachgewiesen worden, meistens aber zeigen diese einen positiven Traumatotropismus. Daß dieser nicht mit der eingangs erwähnten rein mechanisch erfolgenden einseitigen Wachstumshemmung verwechselt werden darf, daß er vielmehr eine echte Reizbewegung ist, ergibt sich schon daraus, daß er vielfach unter beträchtlicher Beschleunigung des mittleren Wachstums erfolgt, und daß Reizleitung auf weite Strecken bei ihm eine gewöhnliche Erscheinung ist. STARK hat gezeigt, daß ähnlich wie bei der phototropischen Reizleitung auch hier diffundierende Stoffe eine Rolle spielen, Stoffe also, die bei der Verwundung entstehen und die bei verschiedenen Spezies gleich oder ähnlich sind, so daß man den traumatischen Reiz aus einer Art in eine andere weiterleiten kann.
Es ist jetzt eine Anzahl von Tropismen besprochen, aber die ganze Reihe der bisher bekannt gewordenen tropistischen Erfolge ist damit lange nicht erschöpft. Vielmehr kennt man außerdem noch einen Thermotropismus, bei dem die Wärme, einen Rheotropismus, bei dem das fließende Wasser und einen Galvanotropismus, bei dem galvanische Ströme den Reiz abgeben. Auf diese Tropismen kann hier nicht eingegangen werden.
5. Haptotropismus [Thigmotropismus][275].
Eine Einkrümmung nach einseitiger Berührung findet namentlich bei Kletterpflanzen statt, die mit Hilfe solcher Greifbewegungen eine Stütze umfassen und sich an ihr befestigen. Die Einrichtung läuft also auf das gleiche hinaus wie bei den Windepflanzen, doch sind die Bewegungen hier durchaus keine geotropischen. Es sind Seitenorgane verschiedenen morphologischen Charakters (vgl. S. 155), die die Befestigung besorgen, und die entweder ihrer normalen Leistung und Ausbildung (als Laubblätter, Laubsprosse, Blütensprosse) treu geblieben, oder aber, wie dies meist der Fall ist, zu typischen „Ranken“ geworden sind, um ausschließlich und in vollkommenster Weise der Umklammerung zu dienen. Die einseitige Berührung mit einem festen Körper bewirkt eine starke Wachstumsbeschleunigung, die maximal der Berührungsstelle gegenüber erfolgt und von da aus bis zur berührten Stelle allmählich ausklingt, so daß sie auch noch in der Mittellinie einen nennenswerten Betrag erreicht. So wird die berührte Stelle konkav, und der berührende Körper, die Stütze, wird umfaßt. Dies geschieht natürlich um so rascher und leichter, je dünner die Ranke und je kräftiger ihre Reaktion ist. Einige Ranken fassen sehr rasch (Passiflora, Sicyos, Bryonia), andere sind sehr träge (Smilax, Vitis). Da die Krümmung nach dem Anlegen der Ranke an die Stütze sich noch zu verengern strebt, so wird die letztere oft derart fest umwickelt, daß an weichen Stengeln und dgl. tiefe Eindrücke entstehen können.
Von großer Wichtigkeit für die Funktion der Ranken ist der Umstand, daß sie, wie PFEFFER gezeigt hat, nicht durch jeglichen Kontakt, sondern nur durch die Berührung mit den Unebenheiten eines festen Körpers zum Einkrümmen gereizt werden. Auch der heftigste Regenfall wirkt daher nicht als Berührungsreiz, und selbst der bis zur Quetschung gesteigerte Anprall reinen Quecksilbers geht ohne eine spezifische Reizwirkung vorüber, wogegen ein vom Luftzug bewegtes Baumwollfäserchen von 0,00025 mg Gewicht sie bereits auslösen kann.
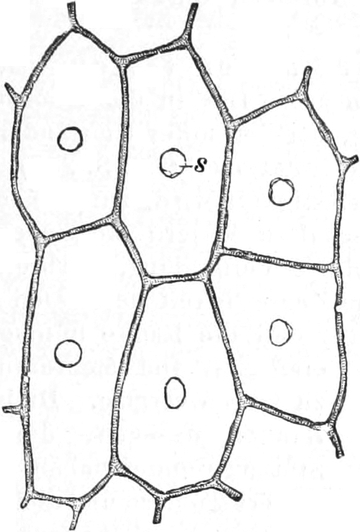
Fig. 286. Oberflächenansicht einiger Epidermiszellen der Rankenunterseite von Cucurbita Pepo mit Fühltüpfeln s. Vergr. 540. Nach STRASBURGER.
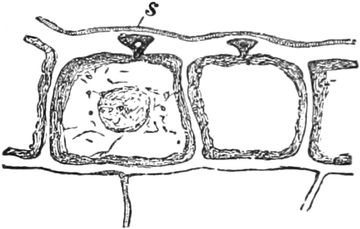
Fig. 287. Querschnitt durch ebensolche Epidermiszellen wie in Fig. 286; im Fühltüpfel s ein sehr kleiner Kalziumoxalatkristall. Vergr. 540. Nach STRASBURGER.
Aller Wahrscheinlichkeit nach wird die Aufnahme so schwacher Reize durch die sog. „Fühltüpfel“ (Fig. 286, 287) begünstigt. Es sind das protoplasmaerfüllte und nach außen stark erweiterte Tüpfel in der Außenwand der Epidermiszellen. Sie finden sich z. B. bei den Cucurbitaceen, können aber selbst bei sehr reizbaren Ranken (z. B. bei Passiflora) auch fehlen.
Die Ranken mancher Pflanzen sind allseitig reizbar und krümmungsfähig (Cobaea, Eccremocarpus, Cissus), andere, so die der Cucurbitaceen u. a. mit eingekrümmtem Gipfel, sind nach FITTING zwar allseitig gegen Berührung empfindlich, krümmen sich aber nur auf eine einseitige Berührung der Unterseite ein, während eine gleichzeitige Reizung der Oberseite in der Hemmung der Einkrümmung zum Ausdruck kommt.
Manche einseitig empfindliche Ranken haben die Fühltüpfel nur auf der reizbaren Unterseite. Überhaupt sind die Ranken mehr oder weniger dorsiventral, und deshalb sind ihre Reaktionen oft schon mehr nastisch als tropistisch.
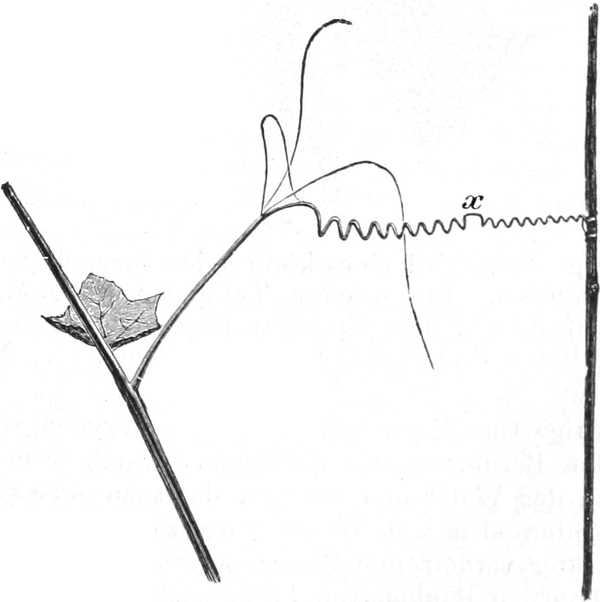
Fig. 288. Stengelstück mit Ranke von Sicyos angulatus, einer Cucurbitacee. Ein Rankenast hat mit seiner Spitze die aufrechte Stütze rechts erfaßt und seine freie Strecke bereits spiralig aufgerollt. Bei x Wendepunkt der Aufrollung. Nach NOLL.
Bei den vollkommensten Ranken bleibt die Krümmung nicht auf den unmittelbar gereizten Teil beschränkt. Abgesehen davon, daß durch das Umwickeln der Stütze immer weitere Stellen der Ranke gereizt werden, pflanzt sich die Krümmung auch auf Regionen fort, die unberührt blieben. Dadurch wird zunächst einmal die Rankenspitze um die Stütze gerollt. Später krümmt sich auch der übrige, zwischen Stütze und Muttersproß ausgespannte Teil der Ranke kräftig ein, so wie ja auch alternde Ranken, die keine Stütze gefunden haben, sich schraubig einrollen. Während aber in diesem Falle eine einzige Schraube entsteht, müssen bei Ranken, die sich oben an einer Stütze befestigt haben, im basalen Teil mindestens zwei einander gegenläufige Schrauben auftreten, die durch einen Wendepunkt (Fig. 288 x) getrennt werden. Durch diese schraubige Rollung wird der Stengel der Kletterpflanze nicht nur näher an die Stütze herangezogen, sondern auch elastisch daran aufgehängt und vor dem Abreißen durch plötzliche Erschütterung geschützt.
Auch in der anatomischen Ausbildung der Ranken treten, nachdem eine Stütze erfaßt ist, vorteilhafte Veränderungen auf. Die in der Knospenlage meist gerollte junge Ranke macht während ihrer Streckung, bei der unter Umständen eine tägliche Verlängerung um 90% erreicht wird, sehr lebhafte Nutationen (vgl. S. 297). Dabei ist sie dünn, biegsam und leicht zerreißbar; ihre Turgorfestigkeit wird, zumal nach der Spitze zu, nur von Kollenchym unterstützt. Diese Eigenschaften ändern sich aber bald, nachdem die Ranke gefaßt hat. Dann tritt oft eine erhebliche Verdickung, Verbreiterung und Erhärtung der umklammernden Teile ein, während die Zugfestigkeit des freien Teiles durch Verholzung und Sklerenchymbildung so erhöht wird, daß die Ranke nunmehr oft eine Last von mehreren Kilo zu tragen vermag. Diejenigen Ranken dagegen, die keine Stütze gefunden haben, pflegen zu verkümmern und abzufallen, nachdem sie sich zuvor oft von selbst noch eingerollt haben.
Ein Vorteil, den die Rankenkletterer vor den Schlingpflanzen voraus haben, ist der, daß sie nicht auf vertikale Stützen angewiesen sind. Die Art der Einrollung ihrer Ranken weist sie aber auch auf dünne Stützen an, da sie an dickeren abgleiten. Nur vereinzelte Rankenpflanzen haben sich von dünnen Stützen unabhängig gemacht und vermögen mittels besonderer Einrichtungen selbst an glatten Wänden emporzuklettern. Ihre Ranken sind nämlich negativ phototropisch und besitzen an oder dicht unter der Spitze kleine knopfartige Gewebewucherungen, die entweder von vornherein vorhanden sind oder erst durch den Berührungsreiz entstehen. Durch ihre Klebrigkeit haften diese Knöpfchen zunächst an der Wand und wachsen dann zu saugnapfähnlichen Scheibchen aus, deren Zellen sich wie Wurzelhaare so eng mit dem Substrat verbinden, daß man eher die später verholzende Ranke zerreißen, als die Haftscheiben ablösen kann. Fig. 208 zeigt derartige Ranken von Parthenocissus tricuspidata. Die Haftscheibchen sind hier an jungen Ranken schon als Knöpfchen vorgebildet. Bei anderen Arten des wilden Weins bilden sich die Haftscheiben aber erst nach der Berührung aus; ihre Ranken vermögen auch dünne Stützen zu umfassen.
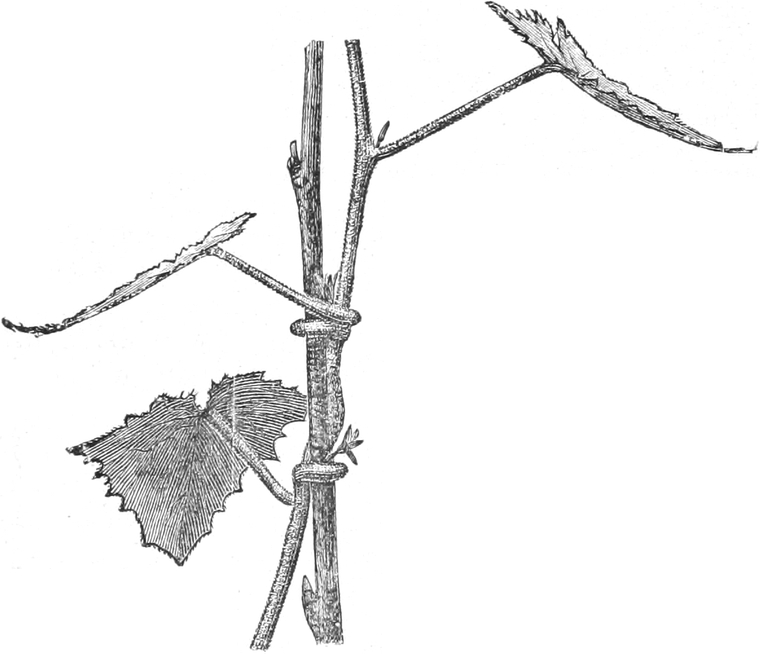
Fig. 289. Teil eines kletternden Stengels von Maurandia scandens. Die unteren Teile der Blattstiele haben die Befestigung des Sprosses übernommen, indem sie die dünne Stütze rankenartig umklammern. Nach NOLL.
Fig. 289 zeigt ein Stück einer Kletterpflanze (Maurandia scandens), deren Blattstiele gleich Ranken reizbar sind. Hier wird die Stütze aber nur etwa einmal oder nur teilweise umfaßt. Ähnlich klettern mittels ihrer Blattstiele die bekannte Kapuzinerkresse und andere Tropaeolum-Arten, Solanum jasminoides, Nepenthes u. a. Bei manchen Tropenpflanzen sind Achselsprosse oder Nebenblätter zu rankenartigen „Kletterhaken“ geworden. Bei Gloriosa, Littonia und Flagellaria ranken fadenförmige Blattenden, und bei manchen Fumaria- und Corydalis-Arten umwickelt außer dem Fiederstielchen auch die Fiederspreite dünne Stützen. Selbst bei niederen Kryptogamen (Florideen) kommen rankende Thallusteile vor. — Die schmarotzenden Sprosse der Cuscuta (Fig. 218) sind zum Winden wie zum Ranken befähigt und machen von beiden Eigenschaften beim Erklimmen und Umklammern ihrer Nährpflanze abwechselnd Gebrauch.
Neuere Untersuchungen[276] haben gezeigt, daß der Haptotropismus sehr viel weiter verbreitet ist, als man bisher angenommen hatte. Etiolierte Keimlinge sind stets haptotropisch, aber auch ältere Sprosse grüner Pflanzen, insbesondere von Schling- und Kletterpflanzen verhalten sich häufig ebenso. Die Empfindlichkeit dieser Pflanzen weicht übrigens von der der Ranken insofern ab, als sie auch durch beliebige Erschütterungen (z. B. auch durch Wasserstrahlen) gereizt werden. Einen Nutzen scheinen sie alle aus diesen Befähigungen nicht zu ziehen.
STARK zeigte, daß beim Haptotropismus der Keimlinge das Resultantengesetz gilt; die Krümmung erfolgt also im Sinne der Resultierenden z. B. aus zwei an verschiedenen Flanken angreifenden Reizen. Er wies ferner nach, daß auch das WEBERsche Gesetz gilt. Werden opponierte Flanken verschieden stark gereizt, so erhält man nur bei gleichem Verhältnis der Reizgrößen die gleiche Einkrümmung. Auch wenn man zwei opponierte Flanken gleichstark reizt und eine einseitige Reizung senkrecht dazu einwirken läßt, gilt das WEBERsche Gesetz[277].
6. Autotropismus[278].
Es ist nötig, hier noch einer Erscheinung von allgemeiner Verbreitung zu gedenken, bei der nicht äußere, sondern innere, in der Pflanze selbst liegende Veränderungen als Reiz wirken. Ganz allgemein kann man nämlich beobachten, daß jede tropistische Krümmung, mag sie nun durch die Schwerkraft, das Licht oder einen anderen Faktor ausgelöst sein, nach Aufhören der Reizwirkung von einer Geradstreckung gefolgt wird. In den meisten Fällen wird sie durch Wachstumsprozesse bewerkstelligt, bei gekrümmten Wurzeln aber kann diese auch durch Kontraktion (S. 249) erfolgen. Dieses Bestreben eines ursprünglich geraden Organs, sich wieder gerade zu strecken, ebenso aber auch das Bestreben eines ursprünglich gekrümmten Organs, seine normale Gestalt wieder anzunehmen, nennt man Autotropismus. Auf manche solche autotropische Erscheinungen mußte früher schon hingewiesen werden. So wurde beim Geotropismus erwähnt, daß die über das Lot hinausgehende Krümmung autotropisch zurückreguliert wird. Es muß aber jetzt gesagt werden, daß jede geotropische Krümmung wieder mehr oder weniger rückgängig gemacht wird, wenn man die einseitige Schwerewirkung aufhebt, das Objekt also auf dem Klinostaten rotieren läßt, und daß ebenso phototropische Krümmungen zurückgehen, wenn die ungleiche Lichtverteilung beseitigt wird usf. Auch Ranken, die sich haptotropisch gekrümmt haben, können sich nach Aufhebung des Kontaktreizes wieder gerade strecken. Ja selbst bei Fortdauer der einseitigen Einwirkung läßt sich vielfach ein Rückgang in den tropistischen Krümmungen erkennen. Die physiologische Wirksamkeit der Reize nimmt also offenbar mit der Dauer ihrer Wirkung ab. Der Krümmungsausgleich kann zur völligen Geradstreckung führen, ja er kann sogar gelegentlich über das Ziel hinausschießen, zu einer neuen Krümmung in entgegengesetzter Richtung führen, die dann ihrerseits autotropisch ausgeglichen wird; so kann einer tropistischen Reizung ein Hin- und Herpendeln eines Sprosses folgen. Voraussetzung für das Eintreten des autotropischen Ausgleiches ist nur, daß die Pflanze noch wachstumsfähig ist. Und nicht nur nach tropistischer Reizung, sondern auch nach Krümmungen, die man durch mechanische Biegung einer Pflanze aufgezwungen hat, macht sich der Autotropismus geltend. Was im einzelnen der wirksame Reiz ist, der zur Wiederherstellung der ursprünglichen Körperform führt, wissen wir nicht, doch darf man vermuten, daß die Pflanze da auf innere Spannungen reagiert. So sieht man auch, daß wenn eine tropistische Krümmung mechanisch verhindert wird, nur Spannungen entstehen, auch ein Ausgleich dieser Spannungen autotropisch erfolgt.
b) Nastische Bewegungen[279].
Im Gegensatz zu den tropistischen und taktischen Reizbewegungen, bei denen die Richtung des Reizes in einer ganz bestimmten Beziehung zur Richtung der Bewegung steht, handelt es sich hier um Reaktionen, die entweder überhaupt durch nicht bestimmt gerichtete, also durch diffuse Reize veranlaßt werden, oder bei denen doch eine eventuelle Reizrichtung ohne Einfluß ist. Nastien sind dementsprechend auf dorsiventrale Organe beschränkt, und die Richtung der Bewegung wird hier stets allein von dem reagierenden Organ bestimmt und nicht von der Außenwelt; demnach dienen auch die Nastien nicht der Orientierung im Raum, wie das für die Tropismen der Fall ist. Ihre ökologische Bedeutung ist vielfach noch gar nicht klar; nach GOEBEL sollen sie z. T. völlig nutzlose Bewegungen sein.
Typische nastische Variationsbewegungen liegen bei den Spaltöffnungen[279] vor, deren Bau es mit sich bringt, daß auf Turgorschwankungen Veränderungen der bestehenden Krümmung der Schließzellen, Öffnen oder Schließen, eintritt. Man nimmt freilich wohl vielfach an, daß das bei Wasserverlust eintretende Schließen und das nach Beleuchtung eintretende Öffnen rein mechanisch erfolge; Wasserverlust wird ja eine Minderung der Zellhautspannung zur Folge haben, Lichtzufuhr wird, wenigstens wenn die Möglichkeit der Wasseraufnahme gegeben ist, diese Spannung durch Produktion von Assimilaten steigern. Es kann aber kein Zweifel bestehen, daß neben rein physikalischen Beeinflussungen vielfach auch echte Reizbewegungen eine Rolle spielen. So kann das Licht, so können auch manche andere Faktoren als Reize wirken, auf die hin das Protoplasma die Produktion osmotisch wirksamer Substanzen in bestimmtem Sinne lenkt.
Wie bei den Spaltöffnungen, so können auch bei anderen nastischen Bewegungen Licht und Wärme, chemische Substanzen, außerdem aber auch Erschütterungen die Rolle von Reizen spielen. Meist erfolgt die Bewegung eines bestimmten Organes auf mehrere dieser Reize hin in gleicher oder ähnlicher Weise.
1. Nyktinastische Bewegungen[280].
Viele Laubblätter und Blütenblätter nehmen bei Tag eine andere Ruhelage ein als bei Nacht. Je nachdem der Übergang von der einen zur anderen durch Schwankungen in der Lichtintensität, in der Temperatur oder in beiden Faktoren gleichzeitig bewirkt wird, unterscheidet man zwischen Photo-, Thermo- und Nyktinastie. Nach den mechanischen Mitteln bei ihrer Ausführung sind die Bewegungen teils Wachstums-, teils Variationsbewegungen.
1. Thermonastie. Durch Temperaturschwankungen bedingte Wachstumsbewegungen finden sich namentlich bei Blüten, so z. B. bei Tulipa, Crocus, Ornithogalum, Colchicum und Adonis. Diese Blüten bzw. ihre Perigonblätter oder Kronblätter zeigen nach Temperatursteigerung eine plötzlich einsetzende und nur eine gewisse Zeit währende Wachstumssteigerung, die auf der Innenseite dieser Blätter maximal ist. Die Blüten öffnen sich also. Umgekehrt schließen sie sich bei Abkühlung.
Äußerst empfindlich gegen Temperaturschwankungen erweisen sich die Blüten der Tulpe und des Crocus. Geschlossene Tulpen- und Crocusblüten, die man aus dem Freien ins warme Zimmer bringt, öffnen sich hier in kurzer Zeit, bei einer Temperaturdifferenz von 15–20° C schon in 2–4 Minuten. Empfindliche Blüten von Crocus reagieren schon auf eine Schwankung von 1⁄2° C, die der Tulpe auf 2–3° C.
Fig. 290. Blütenköpfchen einer Composite (Leontodon hastilis), links durch Verdunkelung geschlossen, rechts nach Belichtung geöffnet. Aus DETMER, Physiol. Prakt.
2. Photonastie. In ähnlicher Weise öffnen sich andere Blüten (Nymphaea, Kakteen) und auch die Blütenköpfchen der Kompositen (Fig. 290) auf Erhellung und schließen sich nach Verdunkelung. Umgekehrt verhalten sich die „Nachtblüher“, z. B. Silene noctiflora, Victoria regia, Nicotiana-Arten.
Die Bedeutung dieser Bewegungen dürfte darin liegen, daß die Geschlechtsorgane nur dann exponiert werden, wenn Insektenbesuch zu erwarten ist, zu anderen Zeiten aber vor den Unbilden der Witterung, vor allem vor Regen geschützt werden. Die Nachtblüher sind bei ihrer Bestäubung auf Nachtfalter angewiesen.
3. Nyktinastie. Viele Laubblätter führen nyktinastische Bewegungen aus, die in der Regel mehr vom Licht als von der Temperatur beeinflußt werden. In manchen Fällen, so z. B. bei Chenopodiaceen, Caryophylleen, Balsaminen, manchen Kompositen, sind es, wie bei den Blütenblättern, ausschließlich Wachstumsbewegungen; bei den Leguminosen, Oxalideen und anderen mit Gelenkpolstern versehenen Pflanzen sehen wir dagegen Variationsbewegungen, eintreten. Die ersteren sind natürlich von kurzer Dauer; sie hören auf, wenn die Blätter ausgewachsen sind; die anderen aber werden lange Zeit fortgesetzt. Bei den Variationsbewegungen tritt eine Erhöhung des Turgors mit der Verdunkelung wahrscheinlich in beiden Gelenkhälften ein, jedoch in der Konkavseite schwächer oder langsamer. Überall ist die Nachtstellung — die man auch „Schlafstellung“ nennt, obwohl diese Erscheinungen durchaus nichts mit dem „Schlaf“ der Tiere zu tun haben — durch die vertikale Lage der Blattspreiten charakterisiert, wobei der Stiel oder das Polster entweder nach oben oder nach unten sich krümmt, die Lamina selbst also entweder ihre Unterseite oder ihre Oberseite nach außen kehrt. In der Tagstellung stehen die Flächen ungefähr horizontal oder senkrecht zum Lichteinfall (S. 309) (Fig. 291).
Fig. 291. Sproß von Amicia zygomeris (Leguminose). Links in zerstreutem hellem Tageslicht mit ausgebreiteten Blättchen, rechts nach Verdunkelung in Schlafstellung.
Daß es sich bei den geschilderten Erscheinungen nicht um Phototropismus handelt, ergibt sich daraus, daß die Tagstellung eintritt, einerlei, ob die Unterseite oder die Oberseite stärker beleuchtet ist, oder ob beide gleich hell gehalten werden. Entsprechendes gilt bei der Verdunkelung.
Die Bedeutung der nächtlichen Senkrechtstellung der Laubblätter liegt nach STAHL darin, daß durch sie die Taubildung vermindert und damit die Transpiration gefördert wird. Als Förderung der Transpiration kann auch die Tatsache gedeutet werden, daß vielfach die Spaltöffnungen auf der in der Schlafstellung geschützten Seite der Blätter liegen.
Übermäßig hohe Beleuchtung oder Temperatur veranlaßt die Blätter, die übliche Tagstellung zu verlassen und eine neue Lage aufzusuchen, die entweder mit der Nachtstellung äußerlich übereinstimmt oder ihr diametral entgegengesetzt ist. So sind die Fiederblättchen der Robinie nachts abwärts geschlagen, in zerstreutem Tageslicht flach ausgebreitet; in der heißen Mittagssonne richten sie sich steil aufwärts. — Dieser sog. „Tagesschlaf“ findet sich nur bei den Gelenkblättern und vollzieht sich hier in mechanischer Hinsicht anders als die abendliche Lageveränderung: es tritt keine Turgeszenzsteigerung, sondern eine Erschlaffung ein, die auf zwei Seiten eines Gelenkes ungleich ist.
Periodische Bewegungen[281].
Wenn Blätter längere Zeit hindurch regelmäßige nyktinastische Bewegungen infolge des täglichen Lichtwechsels ausgeführt haben, so setzen sie diese Periodizität einige Tage lang auch in konstantem Licht oder konstanter Dunkelheit fort. Bei manchen Blättern läßt sich durch geeignete experimentelle Maßnahmen auch eine kürzer oder länger als 24 Stunden dauernde Schwingungsperiode herstellen, die dann ebenfalls eine Zeitlang nachwirkt. — Andererseits ist bei gewissen Blüten (Calendula) und Blättern (Phaseolus) festgestellt, daß es auch Bewegungen mit 24 stündiger Periode gibt, die nicht durch den Rhythmus der Beleuchtung und Verdunkelung sowie deren Nachwirkung bedingt sind. Daß diese Bewegungen autonom sind, ist ausgeschlossen. Man muß erwarten, daß noch irgendein Faktor gefunden wird, der für die Periodizität dieser Bewegungen verantwortlich gemacht werden kann. Die von STOPPEL ausgesprochene Ansicht, daß die Schwankungen in der elektrischen Leitfähigkeit der Atmosphäre maßgebend seien, konnte nicht bestätigt werden.
2. Chemonastie[282].
Im gleichen Verhältnis wie die Photonastie zum Phototropismus steht die Chemonastie zum Chemotropismus. Einerlei, von welcher Seite her ein chemischer Reiz (z. B. Dampf von Äther, Chloroform, Ammoniak) empfindliche Ranken trifft, immer wird diejenige Seite konkav, die wir als vorzugsweise haptotropisch empfindlich erkannt haben.
Diese chemonastischen Einkrümmungen der Ranken sind offenbar ohne jeden Nutzen für die Pflanze. Das gleiche gilt von den nastischen Bewegungen der Ranken, die nach Verwundung eintreten (Traumatonastie) oder die sich in ganz gleicher Weise ebenso bei Abkühlung wie bei Erwärmung zeigen (Thermonastie). Dagegen spielen die chemonastischen Bewegungen bei gewissen Insektivoren eine große Rolle.
Sehr ausgeprägte chemonastische Bewegungen sieht man an den Tentakeln von Drosera, die sich nach chemischer Reizung so einkrümmen, daß ihre Oberseite konkav wird, das Drüsenköpfchen also nach der Mitte der Blattscheibe gelangt (Fig. 212). Als Reizmittel dienen einmal solche Stoffe, wie Eiweiß, Phosphate usw., die Drosera zu ihrer Ernährung gebrauchen kann (S. 223), andererseits aber auch gleichgültige und sogar giftige Substanzen. Oft genügen minimale Spuren von ihnen (z. B. 0,0004 mg Ammoniumphosphat), um die Reizbewegung einzuleiten, und zwar müssen diese auf das Köpfchen des Tentakels gelangen, damit die Basis des Tentakels die Einkrümmung ausführt; es besteht also hier, ähnlich wie bei manchen anderen Reizbewegungen, ja noch schärfer als dort, eine Trennung zwischen dem Perzeptionsorgan, das den Reiz aufnimmt, und dem Bewegungsorgan, das die äußerlich sichtbare Reaktion ausführt. Der im Köpfchen aufgenommene Reiz muß zur Tentakelbasis geleitet werden.
Ein Insekt, das sich auf einem randständigen Tentakel niedergelassen hat, wird also durch dessen Krümmung in die Mitte der Blattscheibe gebracht. Die hier stehenden kurzgestielten Tentakel aber senden einen Reiz nach allen randständigen, die sich daraufhin sämtlich nach innen krümmen. So wird also das Insekt immer von vielen Drüsenköpfchen berührt und mit deren verdauendem Sekret übergossen.
Die durch Wachstum erfolgende Krümmung wird ganz in der gleichen Weise ausgeführt wie bei den Ranken; nach der Einkrümmung sind die Tentakel erheblich länger geworden. Mit dem Abschluß des Wachstums hört also die Bewegungsfähigkeit der Tentakel auf, diese können nur einige wenige Male die Krümmung ausführen. Mit den Ranken haben die Droseratentakel ferner noch gemeinsam, daß sie ebenfalls thigmo-, traumato- und thermonastisch reagieren. Zweifellos ist aber ihre chemonastische Reizbarkeit die größte und wichtigste. Chemische Reize lösen auch bei anderen Insektivoren Bewegungen aus, z. B. bei Dionaea und Pinguicula.
3. Seismonastie und Traumatonastie[283].
Bei der soeben erwähnten Insektivore Dionaea muscipula klappen die beiden Blatthälften (Fig. 215) nicht nur nach chemischen, sondern auch nach mechanischen Reizen zusammen. Im Gegensatz zu den nur nach Berührung mit festen Körpern erfolgenden haptotropischen Bewegungen der Ranken oder von Drosera wirkt hier jede durch einen Stoß erzielte Erschütterung als Reiz; die Bewegung kann also auch durch Regentropfen ausgelöst werden. Solche Bewegungen nennt man seismonastische.
Das bekannteste Beispiel für seismonastische Bewegungen liefert die Leguminose Mimosa pudica, ein tropischer Halbstrauch, der wegen seiner hohen Empfindlichkeit den Namen „Sinnpflanze“ erhalten hat. Die Blätter tragen am Ende eines langen Stieles 4 (eventuell 6) fingerartig auseinanderspreizende Sekundärstiele, die mit zahlreichen Paaren feiner Blättchen in fiederförmiger Anordnung besetzt sind (Fig. 292). An der Basis des primären und der sekundären Blattstiele sowie der Fiederblättchen finden sich Gelenkpolster, so daß alle Teile beweglich sind. Die Lichtlage der ungereizten Blätter zeigt Fig. 292 links. Wird das Blatt erschüttert, dann führen alle seine Teile bei günstiger Temperatur (25–30° C) und Feuchtigkeit sehr rasche Bewegungen aus, die dem Blatt ein völlig verändertes Aussehen geben. Die Fiederblättchen klappen nach oben und vorn zusammen, die Sekundärstiele legen sich nach vorn zu seitlich aneinander, und der Blattstiel senkt sich scharf nach unten (Fig. 292 rechts). Die gereizte Pflanze erholt sich aber bald wieder und nimmt ihre frühere Blattstellung wieder an, wenn ihr Ruhe gelassen wird.
Fig. 292. Mimosa pudica. Links ungereizt in der Tagstellung, rechts durch Erschütterung gereizt, wodurch sich die Blätter zusammengefaltet und abwärts geschlagen haben. B Blütenköpfchen.
Der Stellung eines erschütterten Blattes äußerlich ähnlich ist seine Schlaf- oder Nachtstellung, doch sind die Spannungszustände, die zu den beiderlei Stellungen führen, in dem Gelenkpolster verschieden; auch in der Nachtstellung ist das Blatt noch mechanisch reizbar. — Wie die Schlafstellung, so wird auch die seismonastische Reizstellung durch Turgorschwankungen bewirkt, allein es handelt sich hier um eine Abnahme des osmotischen Druckes und eine Erschlaffung in den konkav werdenden Polsterhälften. Besonders am Hauptstielpolster kann man diese Erschlaffung der übrigens allein reizbaren Unterseite sehr deutlich erkennen; sie ist hier mit einem Austritt von Flüssigkeit aus den Zellen und einer Injektion der Interzellularen mit dieser Flüssigkeit verbunden.
Die gleiche Reizstellung wie nach Erschütterung nimmt das Blatt der Mimosa auch nach Verwundung (Einschneiden, Anbrennen, Anätzen) ein, und die Vorgänge im Gelenk sind bei einer solchen traumatonastischen Reizung die gleichen wie nach seismonastischer Reizung. Auch auf andere Reize: elektrische Schläge, plötzliche Temperaturänderungen, chemische Reize können ganz die gleichen Bewegungen an den Blättern beobachtet werden wie nach Stoßreiz.
Alle diese Reize sind in ihrer Wirkung aber nicht auf das zunächst betroffene Gelenk beschränkt, sondern werden weit fortgeleitet, im Extrem über die ganze Pflanze, überall zu einer Krümmung in den Gelenken führend. Am schnellsten und weitgehendsten erfolgt diese Reizleitung[284] bei den traumatischen Reizen; hier wird sie deshalb am besten näher zu schildern sein. Reizt man etwa ein einzelnes Fiederblättchen am Ende eines Sekundärstieles durch Anbrennen mittels eines Zündholzes, so klappen augenblicklich beide Endfiederchen nach oben, und es folgen ihnen rasch der Reihe nach sämtliche Fiederpaare bis zum Ansatz des Sekundärstieles. Von hier überträgt sich die Erscheinung auf die anderen Sekundärstrahlen, an denen jetzt die Blättchen in umgekehrter Reihenfolge, also spitzenwärts fortschreitend, zusammenschlagen. Haben sich auch die Sekundärstrahlen seitlich aneinander gelegt, und wähnt der Beobachter den Bewegungsvorgang abgeschlossen, dann überrascht ihn plötzlich noch einmal der Hauptstiel durch rasche Abwärtsbeugung. Von diesem einen Blatte aus kann sich der Reiz auch im Stengel, oft bis 50 cm weit, fortpflanzen und auf andere Blätter übertragen. Doch auch von der Wurzel aus kann sich der Reiz bis in die Blätter fortpflanzen.
Die Geschwindigkeit der Reizleitung kann nach Verwundung 10 cm, nach Stoß bis zu 3 cm in der Sekunde betragen, also recht ansehnlich sein. Immerhin steht sie hinter der Reizleitung in den Nerven des Menschen weit zurück. Wenn auch noch nicht sicher nachgewiesen ist, wie die Reizleitung bei Mimosa erfolgt, so steht doch fest, daß sie von der Leitung einer Erregung in den Nerven oder selbst von der Reizleitung in anderen pflanzlichen Fällen wesentlich verschieden ist. Denn der Reiz geht sicher auch über tote Strecken weg und bewegt sich auch in der lebenden Pflanze in toten Organen, nämlich in den Gefäßen des Holzes. Nach RICCA gelingt es, den Reiz auch durch eine mit Wasser gefüllte Glasröhre weiterzuleiten, und die von diesem Autor ausgesprochene Vermutung, daß es sich um eine Fortleitung von Stoffen handle, die bei Berührung oder Verwundung entstehen, hat manches für sich. Im übrigen scheint die Reizleitung nach Berührung etwas anders zu erfolgen als die nach Verwundung.
Ähnlich, doch weniger reizbar wie die Mimose sind manche andere Leguminosen und gewisse Oxalideen. So führen z. B. Robinia Pseudacacia und Oxalis acetosella auf kräftige mechanische Reize hin Bewegungen aus, die freilich viel unbedeutender sind als die der Mimose. In der Regel bedarf es bei diesen Pflanzen mehrerer Stöße, um den Reiz auszulösen, während bei Mimosa ein einziger genügt; auch vergrößert sich bei ihnen der Reizerfolg mit Zunahme der Stöße, während bei Mimosa jeder überhaupt wirksame Reiz unter normalen Bedingungen gleich die maximale Bewegung auslöst. Auch die Blattbewegungen nach Verwundung sind nicht auf Mimosa beschränkt.
Die Reaktionsfähigkeit der Mimose auf Stoßreiz hängt selbstverständlich weitgehend von Außenfaktoren ab, und jeder dieser Faktoren kann, wenn er im Übermaß oder in zu geringem Maß geboten wird, zu einem Starrezustand führen. Die Reizbewegungen der Mimose treten nur bei genügend hoher Temperatur lebhaft ein; unter einem gewissen Wärmegrad (15°) findet überhaupt keine Bewegung statt, es ist dann Kältestarre eingetreten. Bei etwa 40° Lufttemperatur tritt dagegen Wärmestarre, bei längerem Aufenthalt im Finstern Dunkelstarre ein. Im Vakuum, in Wasserstoff, in Chloroformdämpfen, Leuchtgas usw. tritt ebenfalls Bewegungslosigkeit ein, die teils durch Sauerstoffmangel, teils durch unmittelbare Giftwirkungen bedingt ist. Wirken die zu Starrezuständen führenden nachteiligen Verhältnisse nicht zu lange ein, dann kann der frühere reizbare Zustand wiedergewonnen werden. — Auch bei anderen Reizerscheinungen treten uns ähnliche Starrezustände entgegen.
Die Variationsbewegungen, die bei den Staubfäden einiger Berberideen (Berberis, Mahonia) und Kompositen (besonders schön bei Centaurea americana) auftreten, schließen sich in ihrer Mechanik an die der Blätter an. Die Staubfäden solcher Kompositen verkürzen sich nach mechanischer Reizung unter Geradestreckung auf ihrer ganzen Länge oft um 10–20% und lassen so den mit Pollen bedeckten Griffel aus der Staubbeutelröhre heraustreten (Fig. 293). Die Verkürzung erfolgt bei mäßiger Dickenzunahme, unter Wasseraustritt in die Interzellularen, durch die elastische Kontraktion der Membranen. Die Staubfäden von Berberis und Mahonia sind nur an der Innenseite ihrer Basis gegen Berührung empfindlich. Hier tritt dann auch die Verkürzung ein und verursacht, daß sich die Antheren auf die Narbe hinbiegen.
Die zweilippigen Narbenlappen der Griffel von Mimulus, Goldfussia, Martynia, Torenia und anderen Pflanzen schließen sich, wenn sie berührt werden, zusammen. Kurze Zeit darauf öffnen sie sich wieder und sind dann von neuem seismonastisch empfindlich. Ein Öffnen erfolgt auch dann, wenn Pollen auf die Narben gebracht wird und auf ihnen keimt. Unter seiner zerstörenden Einwirkung auf das Narbengewebe kommt es dann aber zu einer Schließbewegung, die keine Reizerscheinung ist.
Fig. 293. Centaurea dealbata. I Blüte nach Abtragung eines Kronblattes. Vergr. 4. II Unteres Ende der Antherenröhre und die Filamente (nach Abtragung des Kronblattes). 1 ungereizt, 2 nach Reizung verkürzt. Vergr. 21.
Wenn auch die Extreme von Haptotropismus einerseits, Seismonastie andererseits eine ganz verschiedenartige Reizbarkeit aufweisen, so fehlt es doch nicht an Pflanzen, die in ihrer Empfindlichkeit zwischen Stoßreizbarkeit und Kontaktreizbarkeit vermitteln; namentlich gewisse etiolierte Keimlinge, deren Haptotropismus oben (S. 315) erwähnt wurde, sind dadurch ausgezeichnet, daß sie auch durch Wasserstrahl und durch Stoß — freilich schwächer als durch Streichen mit festen Körpern — gereizt werden können[285]. In bezug auf die Mechanik der Bewegung folgen nicht alle seismonastisch empfindlichen Pflanzen dem Beispiel der Mimose. Bei Dionaea soll die Krümmung in ähnlicher Weise wie bei den Ranken durch Wachstum erfolgen.
III. Rückblick auf die Reizerscheinungen[286].
Reizerscheinungen sind bei den Organismen ganz außerordentlich häufig. Bei den Bewegungen, die in diesem dritten Abschnitt der Physiologie behandelt wurden, spielen sie eine so große Rolle, daß hier fast ausschließlich von Reizen die Rede war. Aber auch im zweiten Abschnitt (Formwechsel) konnten die Reize nicht übergangen werden, und es zeigte sich, daß die gleichen Faktoren, die Bewegungen auszulösen vermögen, auch in der Formbildung der Pflanze die Rolle von Reizen spielen. Am wenigsten traten die Reize bei Behandlung des Stoffwechsels hervor, weil hier schon manche Erscheinung ihre exakte chemische Erklärung gefunden hat, die man früher als Reizwirkung zu betrachten geneigt war. Wenn auch zu hoffen ist, daß der Reizbegriff mehr und mehr eingeschränkt werden kann, so sind wir doch heute gewiß noch nicht so weit, ihn entbehren zu können, wie manche etwas stürmische Autoren glauben. Bei der Wichtigkeit des Gegenstandes empfiehlt es sich aber, das zerstreut Vorgebrachte hier am Schlusse kurz zusammenzufassen und dabei auch einen Blick auf die Reizerscheinungen im Tierreich zu werfen.
Zunächst ist hervorzuheben, daß im großen und ganzen die gleichen äußeren Faktoren in der Pflanze und im Tier eine Reizwirkung entfalten, nämlich das Licht, die Wärme, mechanische Einflüsse (Schwerkraft, Druck, Stoß), chemische Einflüsse, galvanische Ströme. Ein Unterschied zwischen den extremen Vertretern der zwei Reiche besteht nur insofern, als die Pflanzen nicht auf Schallwellen ansprechen.
Wenn man diesen Faktoren nun eine auslösende Wirkung zuschreibt (S. 184), so soll damit nur gesagt sein, daß sie nicht die Energie für das weitere Geschehen liefern, sondern daß sie die Verwendung anderer, in der Pflanze disponibler Energie veranlassen. Durchaus nicht soll etwa behauptet werden, daß notwendigerweise jede Proportionalität zwischen Reizgröße und Reizeffekt fehlen müsse. Es gibt ja Auslösungen, wie z. B. bei Mimosa, wo jeder überhaupt wirksame Stoßreiz die volle Senkung des Blattes herbeiführt, und solche Fälle zeigen die bloß auslösende Bedeutung des Reizes besonders klar. Allein wenn, wie vielfach bei geotropischen und phototropischen Reizen, eine Zeitlang wenigstens eine Proportionalität zwischen Reizgröße und Krümmungsgröße besteht, so spricht das in keiner Weise gegen Auslösung.
Sehr viel größere Schwierigkeiten stehen dem Auslösungsbegriff auf anderen Gebieten gegenüber. So hat KLEBS betont, daß bei vielen Entwicklungsvorgängen nicht ein einzelner Außenfaktor maßgebend sei, sondern daß eine quantitative Veränderung aller Lebensbedingungen eintreten müsse. Solche quantitative Änderung der Lebensbedingungen führt z. B. Blühen nach vorhergehendem vegetativem Wachstum herbei; rein quantitative Änderungen in der Lichtintensität können bei Farnprothallien weitgehend die Gestalt bedingen. Da ist es, ähnlich wie bei den unten noch zu nennenden stationären Reizen, schwer, an dem Begriff der Auslösung festzuhalten. Nach dem heutigen Stand unserer Kenntnisse kann man also nur sagen, daß eine einheitliche Definition für „Reize“ nicht mehr möglich sei, es sei denn, daß man mit SACHS etwas unbestimmt sagt: „unter Reizbarkeit versteht man die eigentümliche Art, wie lebende Organismen auf Außenfaktoren antworten“. Allenfalls kann man noch hinzufügen, daß die Eigentümlichkeit darin besteht, daß zwischen erstem Anlaß und letzter Reaktion sich zahllose Vorgänge einschieben. Gewiß wird der Reiz sehr häufig nur auslösend wirken, aber es ist möglich, daß er gelegentlich auch energetisch oder auch katalytisch, d. h. nur beschleunigend, wirkt.
Damit nun der Reiz vom Protoplasma aufgenommen werden kann, muß dieses im reizempfänglichen Zustand sich befinden. Es ist sehr wichtig zu konstatieren, daß dieser Zustand unter Umständen fehlen kann, unter denen andere Funktionen des Protoplasmas völlig normal ausgeübt werden. Die Reizempfänglichkeit („Empfindlichkeit“) des Protoplasmas ist nämlich sehr weitgehend von Außeneinflüssen abhängig, und es können zum Teil dieselben Faktoren, die reizauslösend wirken, zum Teil auch andere die Empfindlichkeit hemmen oder auch steigern. Unter den hemmenden Stoffen sind besonders erwähnenswert die sog. Narkotika (Äther, Chloroform, Chloralhydrat), weil sie ja auch in der Tierphysiologie eine vergleichbare Rolle spielen. Sie können im Extrem eine bestimmte Reizbarkeit, z. B. die phototaktische, ganz aufheben, während Bewegungsfähigkeit erhalten bleibt. — In anderen Fällen fehlt dem Protoplasma die Reizbarkeit aus inneren Gründen. Endlich kann auch die Reizempfänglichkeit gegeben sein, aber sie kann doch nicht zu einem sichtbaren Erfolg führen, weil die Reaktionsbefähigung fehlt. So haben wir z. B. vielfach Grund zur Annahme, daß auch ausgewachsene Organe geotropisch reizbar sind; aber zu einer Krümmung kann es bei ihnen nicht kommen.
Jeder Reiz muß nun eine unsichtbare, für ihn charakteristische Veränderung im Protoplasma herbeiführen, die von einer ganzen Kette von weiteren Veränderungen gefolgt wird, deren letzte als „Reaktion“ bezeichnet werden; man versteht darunter die äußerlich sichtbaren Erfolge der Reizung. Die primäre Veränderung muß aber vor allem eine gewisse Größe haben, damit schließlich ein äußerlich sichtbarer Effekt zutage treten kann. Es hat sich indes gezeigt, daß auch Reize, die diese „Schwelle“ nicht erreicht haben, sog. unterschwellige Reize, wenn sie in passender Folge wiederholt werden, sich addieren können und schließlich doch zu einem sichtbaren Effekt führen. Somit muß man betonen, daß auch jeder einzelne unterschwellige Reiz einen Eindruck im Protoplasma hinterläßt.
In vielen Fällen genügt das einfache Vorhandensein des Reizfaktors, um an der reaktionsfähigen Pflanze eine Reizerscheinung auszulösen. Alle für das Leben unentbehrlichen Faktoren müssen in diesem Sinn als Reize betrachtet werden.
Für gewöhnlich sieht man aber von den durch die normalen Lebensbedingungen erzielten „stationären“ Reizen ab und betrachtet nur diejenigen Einwirkungen als Reize, die durch Veränderungen im bisherigen Zustand erzielt werden. Die Veränderungen aber können entweder im Raum oder in der Zeit erfolgen. Wenn eine Veränderung nur in der Zeit stattfinden soll, muß ein bisher schon wirkender Faktor fernerhin seine Qualität oder Intensität ändern, oder ein neuer Faktor muß zu den bisherigen hinzutreten; dabei kann die Veränderung an dem reizbaren Organ allseits gleichmäßig erfolgen. Wir nennen solche Reize diffuse oder homogene. Besteht dagegen die Veränderung darin, daß ein Faktor einseitig ein Organ trifft (räumliche Änderung) oder wenigstens die eine Seite mehr als die anderen, so spricht man von einseitigen oder anhomogenen Reizen. Als Beispiele für diffuse Reizung führen wir an: das Fallen oder Steigen der Temperatur, die Veränderung der Lichtintensität und Lichtqualität, oder überhaupt das Auftreten von Licht nach zuvoriger Dunkelheit. Als Beispiele für anhomogene Reizung seien eine einseitige Erwärmung, eine einseitige Beleuchtung, eine einseitige Einwirkung von Chemikalien genannt. Es kann also ein und dasselbe Reizmittel zu diffuser wie zu anhomogener Reizung führen, und deshalb hat man nicht nur vom Reizmittel, sondern auch vom Reizanlaß, d. h. der Art der Einwirkung des Mittels zu reden. — Unter Umständen kann übrigens auch ein an sich homogener Reiz zu anhomogener Reizung führen, nämlich dann, wenn die Pflanze durch ihren Bau eine nur einseitige Wirkung des Reizes gestattet oder wenn sie einseitig empfindlicher ist. Dies trifft vor allem bei dorsiventralen Organen zu.
Von Reizen, die unseren eigenen Körper treffen, erlangen wir wenigstens vielfach dadurch Kenntnis, daß sie uns „zum Bewußtsein kommen“. Bei allen anderen Organismen aber können wir die Existenz der Reizbarkeit nur daran erkennen, daß einem Reiz früher oder später eine Reaktion folgt. Diese Reaktion kann darin bestehen, daß eine schon im Gange befindliche Aktion beschleunigt, gehemmt oder in andere Bahnen gelenkt wird, oder daß neue Aktionen ausgelöst werden. Die Aktionen selbst aber können sich entweder im Stoffwechsel oder im Formwechsel oder im Ortswechsel äußern, genauer gesagt, sie können ihren Hauptausdruck, den uns am meisten auffallenden Effekt, auf einem der genannten Gebiete haben.
Sicher liegt zwischen der Perzeption eines Reizes und der Reaktion immer eine Kette zahlloser Einzelvorgänge. Von diesen Teilvorgängen des Reizprozesses wissen wir im allgemeinen nicht viel. Manchmal aber, nämlich dann, wenn die Reaktion an anderer Stelle erfolgt als die Perzeption, ist ein Glied dieser Teilprozesse, nämlich die Reizleitung ohne weiteres bemerkbar. Die Unterscheidung dreier Einzelvorgänge: Reizperzeption, Reizleitung und Reizreaktion erinnert uns um so mehr an die Verhältnisse bei den höheren Tieren, je mehr besondere Organe für sie ausgebildet sind. So ist das Tentakelköpfchen von Drosera das Perzeptionsorgan, der obere Teil des Stieles das Leitungs-, der untere Teil das Reaktionsorgan.
Wenn der Physiologe von Empfindung, von Stimmung, von Sensibilität usw. redet, wenn er also Ausdrücke verwendet, die dem Seelenleben des Menschen entnommen sind, so will er damit zweifellos auf Ähnlichkeiten[287] hinweisen, die auf dem Gebiete der Reizerscheinungen in den beiden Reichen bestehen, aber es liegt ihm doch im allgemeinen ganz fern, der Pflanze eine „Seele“ zuzuschreiben. Wenn es erlaubt ist, von der Empfindlichkeit einer Wage und von der Empfindlichkeit eines Menschen zu sprechen, so ist auch nichts dagegen einzuwenden, wenn man von „Empfindung“ bei Tier und Pflanze redet, auch wenn weitgehende Differenzen bestehen. Es ist ja ganz allgemein üblich, alte Namen auf neue Begriffe zu übertragen, dem alten Wort also einen neuen Sinn unterzuschieben. Nötig ist dabei freilich zur Vermeidung von Mißverständnissen eine scharfe Definition. Daran hat es aber in der Regel gefehlt. Und so kommt es, daß der Ausdruck die Pflanze „empfindet“ die Reize dahin geführt hat, ihr eine Seele zuzuschreiben.
Es fragt sich nun, ob Gründe für eine solche Annahme sich finden lassen. In der Tat wird diese einerseits von ernsthaften Forschern, andererseits aber auch von populären Schriftstellern vertreten, welch letzteren es oft mehr auf die erzielte Sensation als auf die Exaktheit ankommt. — So reden dann solche Schriftsteller von „subjektiver Empfindung“, von „Wollen“ und „Denken“ bei der Pflanze; sie schreiben ihr also die ganze komplizierte Psyche des Menschen zu. Die Beweise für eine solche sind aber äußerst dürftig und beschränken sich schließlich auf einige Fälle von nützlicher Reaktion, denen man mit Leichtigkeit gegenteilige Beispiele an die Seite stellen kann. Namentlich bei den raschen Bewegungen der niederen Organismen entsteht leicht der Eindruck von „vernünftigem“ Handeln. Daß die Pflanze denkt, wird niemand ernstlich begründen können, und wenn man fragt, ob sie so empfindet wie wir, ob sie Bewußtsein hat, so kann man nur antworten: Darüber fehlt uns jede Kenntnis.
Wir können vom phylogenetischen Standpunkt aus nur sagen, daß Pflanzen und Tiere von denselben einfachen Organismen aus sich entwickelt haben. In beiden Reichen finden wir eine „Beantwortung“ von Reizen. Im Tier hat sich ein besonderes Organsystem ausgebildet, dessen einzige Funktion es ist, die Reize aufzunehmen und weiterzugeben. Ein solches Nervensystem mit seinen Zentren (Gehirn und Rückenmark) fehlt der Pflanze zunächst einmal in morphologischem Sinn; aber auch der Funktion nach kann man bei ihr ein Zentralorgan nicht finden. Daraus kann man aber nicht mit Sicherheit schließen, daß die Pflanze keine Psyche habe. Geht man im Tierreich abwärts zu immer einfacheren Formen, so schwindet ja auch mehr und mehr die zuverlässige Kenntnis der psychischen Befähigung. Es sind stets nur Analogieschlüsse, die uns die Annahme einer Psyche bei anderen Organismen als bei uns selbst nahelegen. Sie werden um so unsicherer, je weiter wir uns vom Menschen entfernen. Jedenfalls kann man gegen die Annahme einer primitiven Psyche bei der Pflanze keine ernstlichen Einwände machen.
Für die prinzipielle Gleichheit der Grundlage aller Reizerscheinungen kann man nun die Tatsache anführen, daß gewisse Gesetzmäßigkeiten ebenso bei der Reizbarkeit der einfachen Pflanze wie des komplizierten Tieres festgestellt worden sind: das Reizmengengesetz einerseits, das WEBERsche Gesetz andererseits. Das Reizmengengesetz sagt aus, daß weder die Intensität des Reizes noch seine Dauer allein maßgebend ist, daß es vielmehr auf das Produkt beider ankommt. Dieses Gesetz ist beim Geotropismus und Phototropismus nachgewiesen und ist uns dort auch in der Form des Sinusgesetzes, des Resultantengesetzes und des Talbotgesetzes entgegengetreten. Auch bei Tieren ist gelegentlich das Reizmengengesetz gültig befunden, und es ist ferner bei manchen anderen Vorgängen an der Pflanze beobachtet worden, z. B. bei der wachstumshemmenden Lichtwirkung an der Koleoptile von Avena und bei der Bildung des roten Farbstoffes in den Zellen des Buchweizens.