ZWEITER TEIL Spezielle Botanik. (continued 5)
Reading edition
Die Makrosporophylle tragen in der Regel zwei Makrosporangien. Die meist nur in Einzahl vorhandene Makrosporenmutterzelle geht eine Tetradenteilung ein (Fig. 558); doch entwickelt sich von ihren vier Tochterzellen nur eine zum Embryosacke, der Makrospore. Sie verdrängt die Schwesterzellen und nach und nach den gesamten sporogenen Zellkomplex. Die Makrospore füllt sich unterdessen mit Prothalliumgewebe, das aus wiederholten Teilungen ihres Zellkernes und zugehörigen Zellplasmas hervorgeht und den ganzen Innenraum einnimmt (Fig. 559). Am Scheitel des Prothalliums werden Archegonien angelegt, die aus einer mächtigen Eizelle und einem kurzen Halsteil bestehen und denen der Pteridophyten und Cycadeen auch darin gleichen, daß kurz vor der Befruchtung eine kleine Bauchkanalzelle von der Eizelle abgegeben wird (Fig. 560), die bald zugrunde geht.
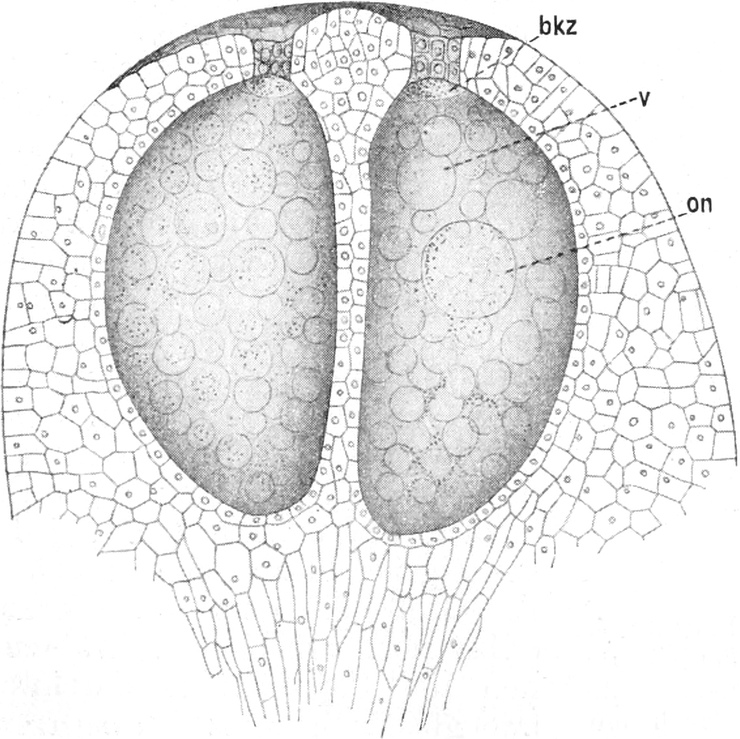
Fig. 560. Längsschnitt durch den Scheitel eines Embryosackes von Picea excelsa mit zwei Archegonien, deren Bauchkanalzelle bkz bereits abgeteilt ist, on Eikern, v Zahlreiche Eiweiß-Vakuolen. Nach E. STRASBURGER. 80.
Die Befruchtung selbst sei bei Torreya taxifolia dargestellt. Der Pollenschlauch ist nach Durchbrechung der oberen Abschlußwandung in die Eizelle eingebrochen, und der fertile Spermakern hat sich auf den Eikern gelegt, während das Plasma der Spermazelle beide Kerne umhüllt. Der übrige Inhalt des Pollenschlauches, wie er in Fig. 557 vorhanden war, findet sich in einer oberen Ecke der Eizelle zusammengedrängt.
Die weitere Verschmelzung der Kerne zum Keimkern zeigt Fig. 562 A für Picea excelsa.
In einigen Fällen (vielleicht aber bei allen Cycadeen und Koniferen) ist die Kernvereinigung weit komplizierter als bisher angenommen. So schildert HUTCHINSON für Abies balsamea den Vorgang der Verschmelzung derart, daß die beiden miteinander vereinigten Kerne sich jeder für sich teilen und dabei die haploide Chromosomenzahl erkennen lassen. Die Chromosomen treten dabei aber paarweise zusammen, was der eigentlichen Verschmelzung entsprechen dürfte, gerade wie es im Diakinesestadium der heterotypischen Teilung zu sehen ist. Dann wird durch Querteilung der Paare und Auseinanderweichen der beiden Längshälften die zu fordernde diploide Zahl hergestellt. CHAMBERLAIN schließt sich dieser Darstellung für die Cycadee Stangeria an.
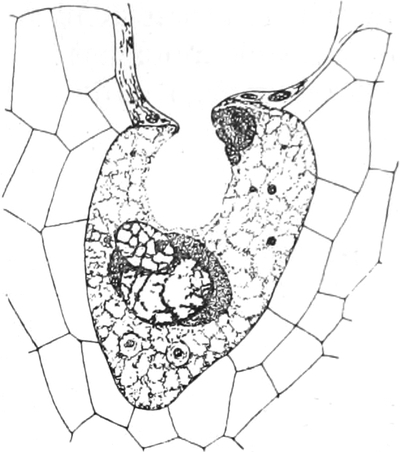
Fig. 561. Befruchtung bei Torreya taxifolia. Nach COULTER und LAND. Beschreibung im Text.
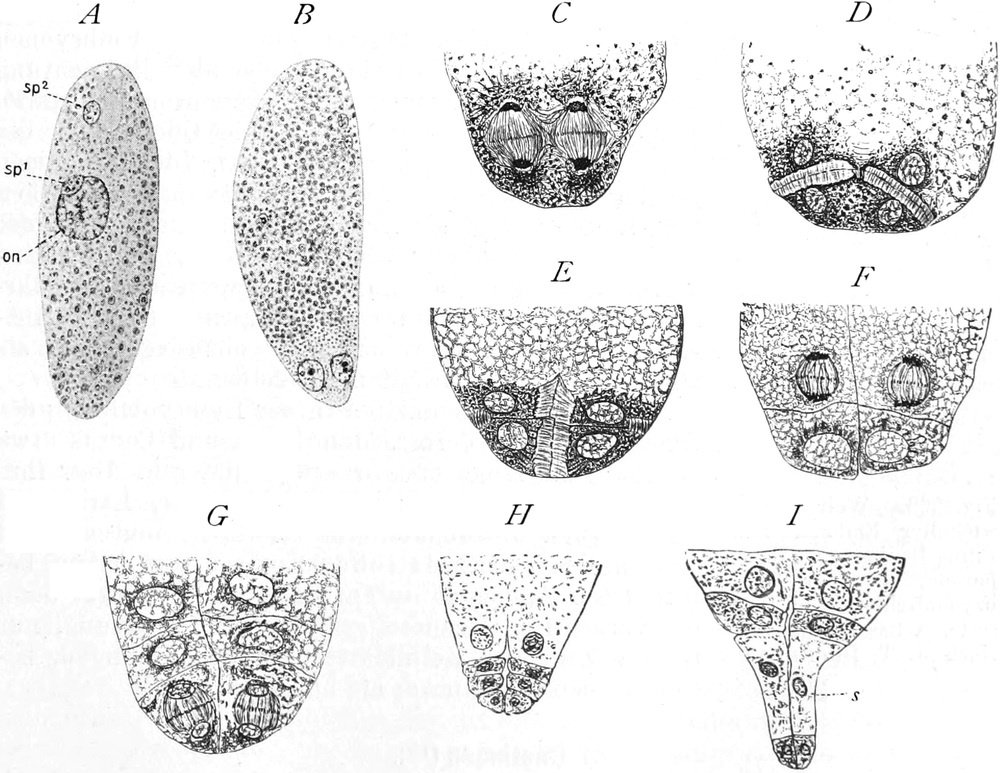
Fig. 562. A, B Picea excelsa. Vergr. 73. Nach K. MIYAKE. C–I Pinus Laricio. C–G Vergr. ca. 200. Nach N. I. KILDAHL. H, I Vergr. 104. Nach COULTER und CHAMBERLAIN. on Eikern, sp1, sp2 Spermakerne, s Suspensor. Beschreibung im Text.
Nach doppelter Teilung des Keimkernes wandern die vier Kerne ins untere Ende des Eies und ordnen sich in einer Ebene nebeneinander an (Fig. 562 B); da die weitere Entwicklung des Embryos nicht für alle Gattungen die gleiche ist, so sei sie hier zunächst für Pinus dargestellt.
Bei Pinus Laricio (Fig. 562) wandern die aus der zweifachen Teilung des Keimkernes entstandenen vier Kerne ebenfalls in die Basis der Keimzelle, ordnen sich in einer Fläche nebeneinander an und teilen sich wieder (C). Zwischen diesen acht Kernen, die in zwei Stockwerken übereinander liegen, bilden sich zunächst Querwände, dann Längswände aus; so entsteht ein achtzelliger „Proëmbryo“ (DE). Die vier oberen Zellen bleiben jedoch gegen die Keimzelle hin offen, so daß ihr Plasma mit dem Keimzellplasma in Verbindung steht. Diese vier oberen Zellen treten zunächst in Teilung ein (F). Darauf folgt Teilung der unteren vier Zellen (G). Der Proëmbryo besteht demnach jetzt aus vier Etagen von je vier Zellen. Das oberste Stockwerk bildet den Abschluß der Keimzelle. Die drei übrigen beteiligen sich an der weiteren Entwicklung in der Art, daß das obere, wohl als Rosette bezeichnete, durch eine stärkere Wand, die Basalplatte, völlig gegen das Ei abgeschlossen wird (Fig. 563 p). Das mittlere wächst zum Embryoträger oder Suspensor (Fig. 662 I s) aus und schiebt die letzte, zur Embryobildung bestimmte Etage vor sich her in das mit Nährstoffen gefüllte Prothalliumgewebe hinein.
Nach neueren Untersuchungen von BUCHHOLZ spalten sich die Suspensorzellen mit den jungen Embryoanlagen bei Pinus ausnahmslos auseinander (Fig. 563), so daß jedes befruchtete Archegonium vier Embryonen liefert und bei der durchweg erfolgenden Befruchtung von mehreren Archegonien eine außergewöhnlich starke Polyembryonie die Regel ist. Eine Querteilung der Suspensorzellen findet nicht statt, doch nehmen die an den Suspensor stoßenden oberen 1–3 Reihen von Embryozellen als „Embryonalschläuche“ an der weiteren Verlängerung lebhaften Anteil, was insofern von Bedeutung ist, als nur der am weitesten ins nährstoffreiche Prothallium eingedrungene Embryo Aussicht hat, im Konkurrenzkampfe obzusiegen und als alleiniger Embryo erhalten zu bleiben.
Die Verschiedenheiten in der Embryobildung der Abietineen sind derart, daß Pinus und Cedrus etwa gleichaltrig, Tsuga erst in etwas späterem Alter ihre Embryoanlage spalten; bei Abies, Picea, Larix und Pseudotsuga unterbleibt eine Spaltung, und es wird stets nur ein einheitlicher Embryo aus jedem befruchteten Archegonium entwickelt. Er besitzt dann die vorher für Cycadeen geschilderte Gliederung, nur ist die Zahl der Keimblätter bei den Koniferen, besonders den Abietineen, oft höher als zwei.
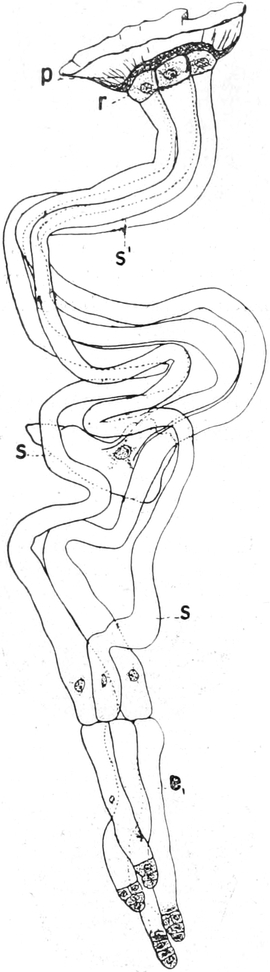
Fig. 563. Weiter entwickelter Embryo von Pinus Banksiana. s Suspensor, e1 erster Embryonalschlauch, r Rosette, p Basalwand. 80. Nach J. T. BUCHHOLZ.
c) Gnetineen[464].
Die letzte Ordnung der Gymnospermen, die Gnetineen, zeigt eine abweichende und eigenartige Entwicklung. Zwar ist die Mikrosporenbildung und -keimung nicht erheblich von derjenigen der anderen Gymnospermen verschieden, wenn auch die Abgrenzung der generativen Zellen minder deutlich zu werden, ja teilweise zu fehlen scheint, so daß zwei gleich große Kerne in gemeinsamer Plasmahülle vorliegen. Aber bei den Makrosporen zeigen sich größere Abweichungen. Die Makrosporen von Ephedra und Welwitschia besitzen ein wohlausgebildetes Prothallium. Ephedra entwickelt am Scheitel Archegonien, die etwa denen der Koniferen gleichen. Welwitschia läßt 2–5 kernige Schläuche vom Prothalliumscheitel aus in das Nucellusgewebe hinein den eindringenden Pollenschläuchen entgegenwachsen; ihre Deutung als Archegonien wird durch die bauchige Erweiterung der Basis wahrscheinlicher. Gnetum endlich bildet kein Prothalliumgewebe, sondern zeigt den Embryosack (Fig. 564) lediglich mit zahlreichen im Plasma verteilten Eikernen gefüllt. Die beiden generativen Kerne des Pollenschlauches verschmelzen mit je einem weiblichen Kern, dann erst beginnt die Endospermbildung. Auf die Verwendung beider Spermakerne im Embryosack sei mit Rücksicht auf die „doppelte Befruchtung“ der Angiospermen hingewiesen. Von allen beim Eindringen mehrerer Pollenschläuche in größerer Zahl entstandenen Keimzellen kommt nur ein Embryo zu voller Entwicklung.
B. Angiospermen[465]. a) Die Mikrosporen der Angiospermen bilden noch vor ihrem Verstäuben eine Antheridiummutterzelle (Fig. 565 A m), die sich uhrglasförmig von der großen vegetativen Pollenzelle abtrennt, ohne eine Zellulosehaut auszuscheiden. Sie löst sich allmählich von der Außenwandung und liegt zur Zeit der Pollenverbreitung als spindelförmiges Gebilde in der Mitte der Mikrospore neben dem vegetativen Pollenkern (k). Bei der Keimung auf der Narbe wandert der vegetative Kern und hinter ihm die Antheridiummutterzelle in den Pollenschlauch ein. Diese tritt in Teilung, und die beiden generativen Tochterkerne (g) bleiben ohne besondere Abgrenzung einer zugehörigen Plasmamasse frei im Pollenschlauch. Sie sind von länglich ovaler oder ellipsoidischer Form und wandern hintereinander im Schlauch abwärts. Den Gymnospermen gegenüber ist also das Fehlen sowohl der Prothalliumzellen und der sterilen Schwesterzelle des Antheridiums, wie einer Zellulosemembran für dieses, endlich das Auftreten nackter generativer Kerne statt generativer Zellen im Pollenschlauch hervorzuheben. Die Rückbildung des männlichen Prothalliums ist demnach so weit gegangen, daß nur die unumgänglich notwendigen Teile erhalten geblieben sind.
Ob das von HERRIG beobachtete Auftreten zweier Spermazellen bei künstlicher Keimung von monokotylen Pollenkörnern sich bei normaler Keimung ebenfalls zeigt, wäre zu untersuchen.
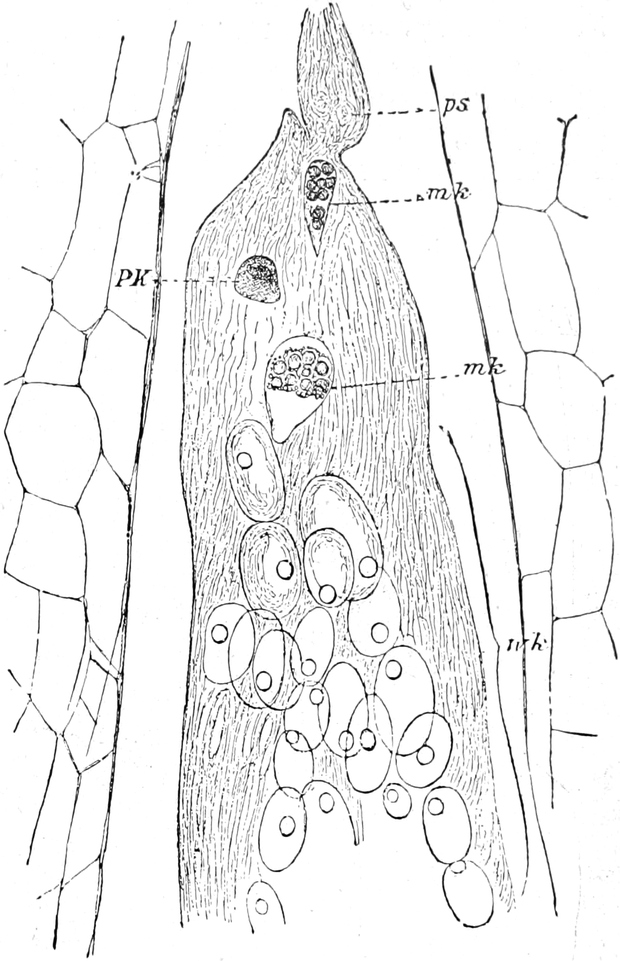
Fig. 564. Embryosackscheitel von Gnetum rumphianum. Kurz vor der Keimzellenbildung. wk Weibliche Kerne, mk männliche Kerne, pk Pollenschlauchkern, ps Pollenschlauch. Vergr. 500.
b) Makrosporen. Die für die Angiospermen charakteristische Abweichung von dem vorher geschilderten Entwicklungsgange des gymnospermen Makrosporangiums beginnt erst, wenn nach der Tetradenteilung der Makrosporenmutterzelle der allein zur Ausbildung gelangende Embryosack seinen Kern wiederum teilt (Fig. 566 1–5). Der „primäre Embryosackkern“ teilt sich, die Tochterkerne weichen auseinander und teilen sich abermals und zum dritten Male. Hierauf erst tritt teilweise Zellbildung um diese Kerne ein (Fig. 566 6–8). Im oberen, der Mikropyle zugekehrten, wie im unteren Ende des Embryosackes entstehen drei nackte nur von Plasmahaut umgebene Zellen; die beiden übrigbleibenden „Polkerne“ wandern gegeneinander in die Mitte der Zelle und vereinigen sich zum „sekundären Embryosackkern“. Die Zellen des unteren Zellendes heißen Antipoden oder Gegenfüßlerinnen; sie entsprechen den vegetativen Prothalliumzellen, wie solche bei den Gymnospermen bis auf Gnetum die ganze Makrospore füllen.
Bei Peperomia hispidula und Pandanus u. a. ist die Zahl der Antipoden eine erheblich größere; ob dieses Verhalten vielleicht als primitives Merkmal zu deuten ist, muß bis auf weiteres dahingestellt bleiben.
Die drei oberen Zellen dagegen stellen den „Eiapparat“ dar (Fig. 568). Zwei einander gleichende seitliche werden als Synergiden oder Gehilfinnen bezeichnet, die dritte, tiefer in den Embryosack hineinragende ist die Eizelle selbst. Die Gehilfinnen vermitteln den Übertritt des Pollenschlauchinhaltes in den Embryosack. Auch hier ist also die Reduktion fast bis an die Grenze des Möglichen gegangen; an Stelle der mehr oder minder zahlreichen Archegonien in der gymnospermen Makrospore ist nur eine Eizelle vorhanden. Die Synergiden kann man entweder als steril gewordene Archegonien oder mit TREUB und PORSCH als Halszellen des zum Eiapparat gewordenen Archegoniums ansprechen (Fig. 568).
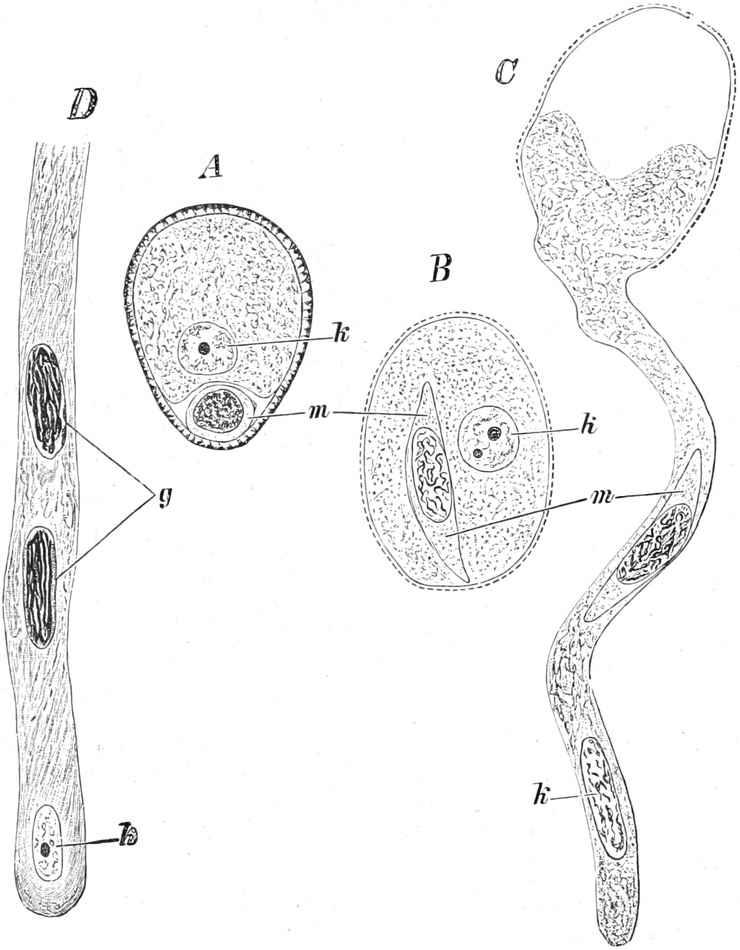
Fig. 565. Pollenkorn von Liliummartagon und seine Keimung. Vergr. 400. k Pollenkornkern, m Mutterzelle des Antheridiums, g generative Kerne. Nach E. STRASBURGER.
In manchen Fällen erfährt die Embryosackmutterzelle keine Tetradenteilung mehr, sondern liefert nur drei oder zwei Tochterzellen, oder sie wird ohne Teilung direkt zum Embryosack, der bei Cypripedium und Plumbagella seinen Inhalt unter Ausfall der letzten Teilung auf Eizelle, zwei Polkerne und einen Antipodenkern, oder bei Cypripedium in anderer Verteilung auf Eizelle, zwei Synergiden und einen Polkern, also jedesmal auf vier Kerne beschränkt, während bei den sich sonst ebenso verhaltenden Lilium-Arten die normale Achtzahl erreicht wird. Die Reduktionsteilung findet dann im Embryosack statt, ist also vom Ende der Sporophytengeneration in den Anfang der Gametophytengeneration verschoben. Für weiter sich findende Abänderungen der Embryosackbildung und -ausstattung vgl.[466].
Da ein direkter Zutritt der Mikrosporen zu den im Fruchtknoten eingeschlossenen Makrosporen hier ausgeschlossen ist, müssen sie auf der Narbe keimen (Fig. 567). Ihre Pollenschläuche durchwachsen die ganze Länge des Griffels, und in der Regel dringt dann ein Schlauchende durch die Mikropyle zum Nucellusscheitel vor. Dieser häufigste Fall des Pollenschlauchzutrittes wird als Porogamie bezeichnet. Doch sind neuerdings zahlreiche Abweichungen davon bekannt geworden.
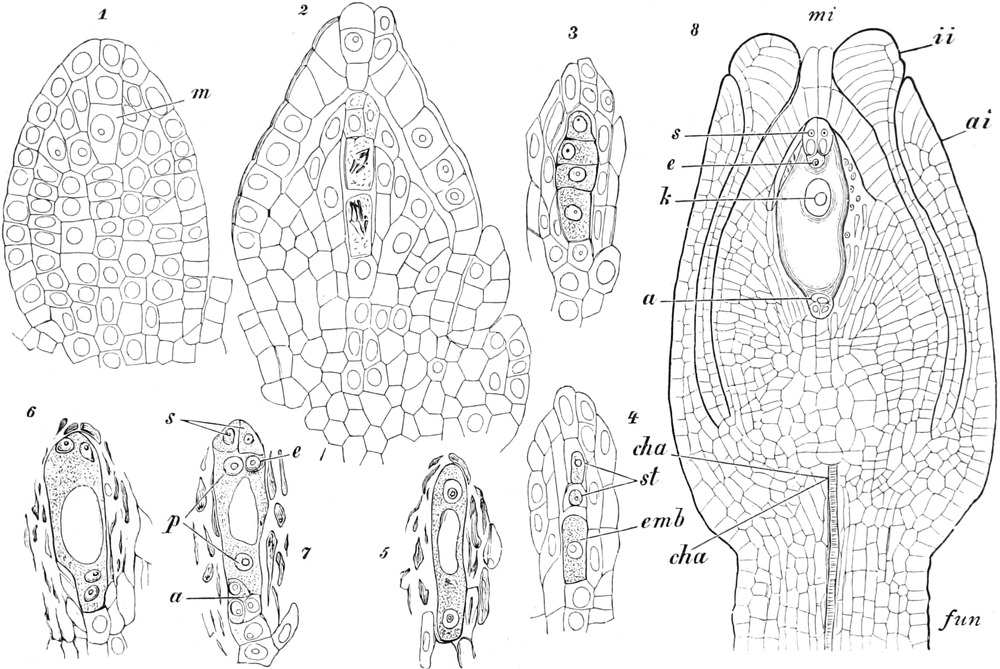
Fig. 566. Embryosackentwicklung von Polygonum divaricatum. 1–7 Vergr. 320, 8 Vergr. 135. m Embryosackmutterzelle, emb Embryosack, st sterile Schwesterzellen, e Eizelle, s Synergiden, p Polkerne, a Antipoden, k sekundärer Embryosackkern, cha Chalaza, mi Mikropyle, ai, ii äußeres und inneres Integument, fun Funiculus. Nach E. STRASBURGER.
Nachdem M. TREUB zuerst für Casuarina nachgewiesen hatte, daß die Pollenschläuche hier von der Chalaza her zu dem höchst eigenartig entwickelten, zahlreiche Makrosporen bergenden sporogenen Gewebe gelangen, ist eine größere Zahl derartiger, als Chalazogamen den normalen Porogamen gegenübergestellter Formen bekannt geworden. Es gehören hierher vor allem die Casuarinaceen, dann die Juglandaceen, Betulaceen, Ulmaceen, Celtoideen, Urticaceen, Cannabinaceen, Euphorbiaceen, die alle das gemeinsame Merkmal haben, daß sie ihre Pollenschläuche innerhalb der Gewebe der Samenanlage verlaufen lassen. Sie verschmähen also den Durchtritt durch die Mikropyle, die in einigen Fällen auch geschlossen wird (bei den Urticaceen) oder die bei den Euphorbiaceen durch den Obturator gedeckt ist, — und bahnen sich den Weg zum Embryosack teils von seinem Chalazaende (Fig. 569), teils von der Seite her zum Eiapparate, indem sie das zwischenliegende Gewebe durchbrechen. Da die genannten Familien nach der Auffassung vieler Autoren am unteren Ende der Dikotylenreihe stehen sollen, hat man in dieser Art des Pollenschlauchwachstums innerhalb der Gewebe eine Annäherung an die ursprünglicheren Verhältnisse bei den Gymnospermen erblicken wollen, wo ebenfalls zur Erreichung des Embryosackes das ganze darüberliegende Gewebe des Nucellus vom Pollenschlauche durchwachsen werden muß (Fig. 559). Weiter findet nun NAWASCHIN, daß auch bei der Entwicklung des Pollenschlauchinhaltes dieser Pflanzen deutliche Anzeichen einer gegenüber der Mehrzahl der Angiospermen niedrigeren Entwicklungsstufe vorhanden sind, indem die beiden generativen Kerne (bei Juglans), von einer gemeinsamen Plasmahülle umgeben, in den Embryosack eintreten, um hier erst allmählich nackt hervorzutreten und ihre Funktionen zu erfüllen. Aller Wahrscheinlichkeit nach handelt es sich in den genannten Familien aber um stark reduzierte Formenkreise, nicht, wie der genannte Autor meint, um aufsteigende; dem Aussehen nach können ja beide übereinstimmen.
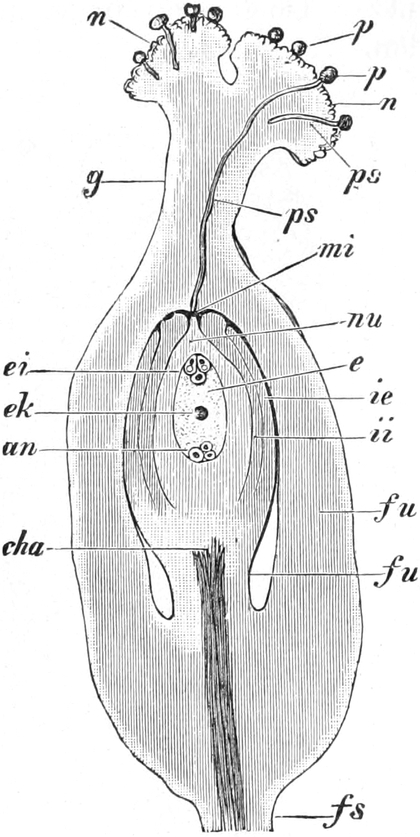
Fig. 567. Fruchtknoten von Polygonum convolvulus mit atroper Samenanlage (schematisiert). fs Stielartige Basis, fu Funiculus, cha Chalaza, nu Nucellus, mi Mikropyle, ii inneres, ie äußeres Integument, e Embryosack, ek Embryosackkern, ei Eiapparat, an Antipoden, g Griffel, n Narbe, p Pollenkörner, ps Pollenschläuche. Vergr. 48. Nach H. SCHENCK.
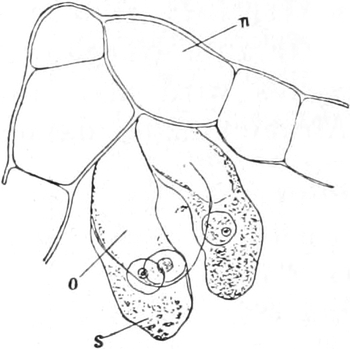
Fig. 568. Funkia ovata. Nucellusscheitel mit Eiapparat vor der Befruchtung, o Eizelle, s Synergide. Vergr. 390. Nach E. STRASBURGER.
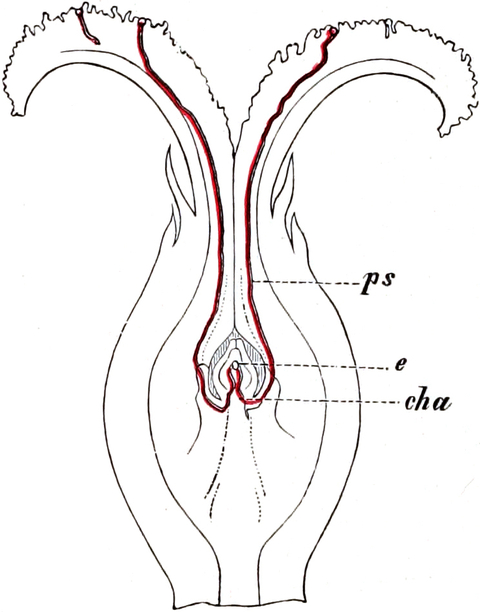
Fig. 569. Längsschnitt durch einen Fruchtknoten von Juglans regia zur Darstellung der Chalazogamie. Vergr. 6. ps Pollenschlauch, e Embryosack, cha Chalaza (schematisiert).
So gelangt der Pollenschlauch mit den beiden generativen Kernen an den Embryosack. Er entläßt seinen Inhalt, welcher durch eine der Synergiden zur Eizelle vordringt. Die betreffende Synergide stirbt ab. Einer der beiden generativen Kerne dringt in die Eizelle ein und verschmilzt mit dem Eikerne: die befruchtete Eizelle umgibt sich mit einer Zellulosemembran. Der zweite generative Kern ist am Ei vorbeigewandert und vereinigt sich mit dem großen „sekundären Embryosackkern“ zum „Endospermkern“ (Fig. 570, 571). Beide männlichen Kerne haben oft pfropfenzieherartig gewundene Form, so daß NAWASCHIN, der das Eindringen und Verbleiben des zweiten generativen Kernes zuerst beobachtet hatte, sie direkt mit den Spermien der Sporenpflanzen vergleicht. Die Weiterentwicklung pflegt sodann mit der Teilung des Endospermkernes einzusetzen, der zunächst eine große Zahl im plasmatischen Wandbelag verteilter Kerne liefert. Durch Ausbildung der Querwände zwischen den einzelnen von je einem Kern beherrschten Plasmabezirken und weitere Vermehrung dieser Zellen zu einem massiven Gewebekörper entsteht das Endosperm (Fig. 579 A).
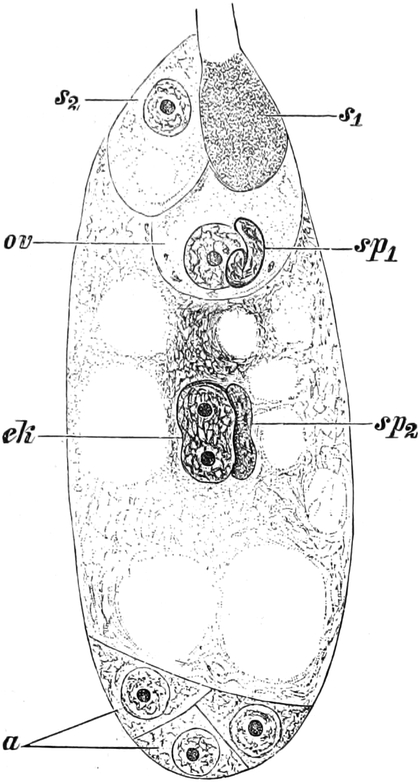
Fig. 570. Befruchtung von Lilium martagon. Einer der männlichen Kerne ist neben dem Eikern, der andere neben den gerade verschmelzenden Polkernen sichtbar. Schematisiert. (Bezeichnung wie Fig. 571.)
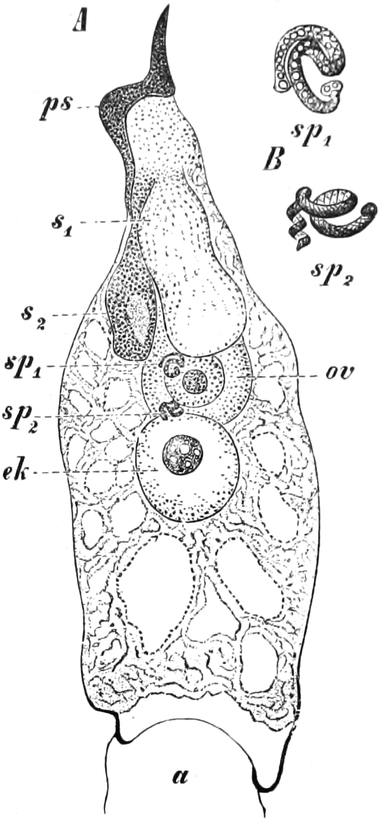
Fig. 571. A Embryosack von Helianthus annuus nach S. NAWASCHIN. B Die männlichen Kerne daraus stärker vergrößert. ps Pollenschlauch, s1 s2 Synergiden, sp1 sp2 männliche Kerne, ov Eizelle, ek Embryosackkern, a Antipoden.
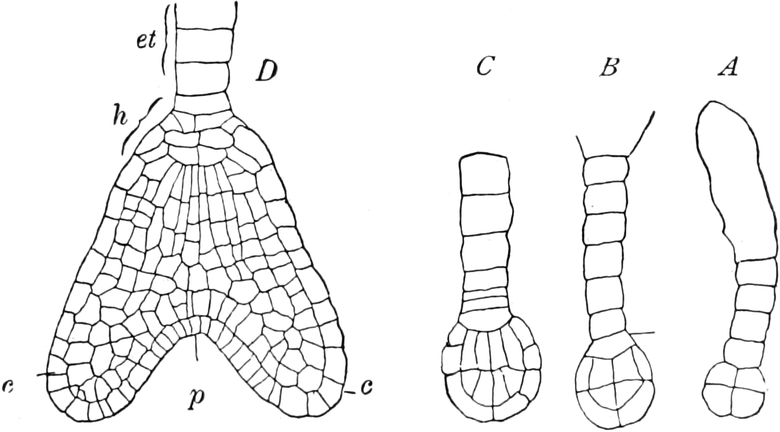
Fig. 572. Entwicklung des Keims von Capsella bursa pastoris. h Hypophyse, et Embryoträger, c Kotyledonen, p Plumula. Vergr. Nach J. HANSTEIN.
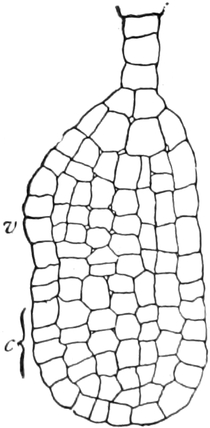
Fig. 573. Junger Keim von Alisma plantago. c Kotyledon, v Vegetationspunkt. Vergr. Nach J. HANSTEIN.
Übrigens ist bei zahlreichen Kompositen, ebenso bei Aponogeton, Potamogeton usw., das Endosperm von der ersten Teilung des sekundären Embryosackkernes an zellulär ausgebildet. Das Stadium der frei im Wandbelag verteilten Kerne fällt hier aus, wie übrigens auch schon W. HOFMEISTER es für verschiedene Familien angegeben hatte.
Das unterscheidende Merkmal im Entwicklungsgange des Angiospermen-Endosperms gegenüber dem Gymnospermen-Prothallium liegt demnach in der Unterbrechung seiner Bildung, in der „fraktionierten Endospermbildung“. Zunächst wird in dem der Befruchtung harrenden Embryosack nur eine Andeutung des Prothalliums, die Antipoden, gegeben. Die eigentliche Endospermbildung dagegen ist von der Weiterentwicklung des betreffenden Embryosackes abhängig gemacht und damit jeder Materialvergeudung vorgebeugt. Den Ausgangspunkt dazu bildet der sekundäre Embryosackkern, welcher einer Anregung zur Weiterentwicklung durch Vereinigung mit dem zweiten generativen Kern des Pollenschlauches zum Endospermkern bedarf. (Vgl. dazu das bei den Gnetaceen Gesagte.)
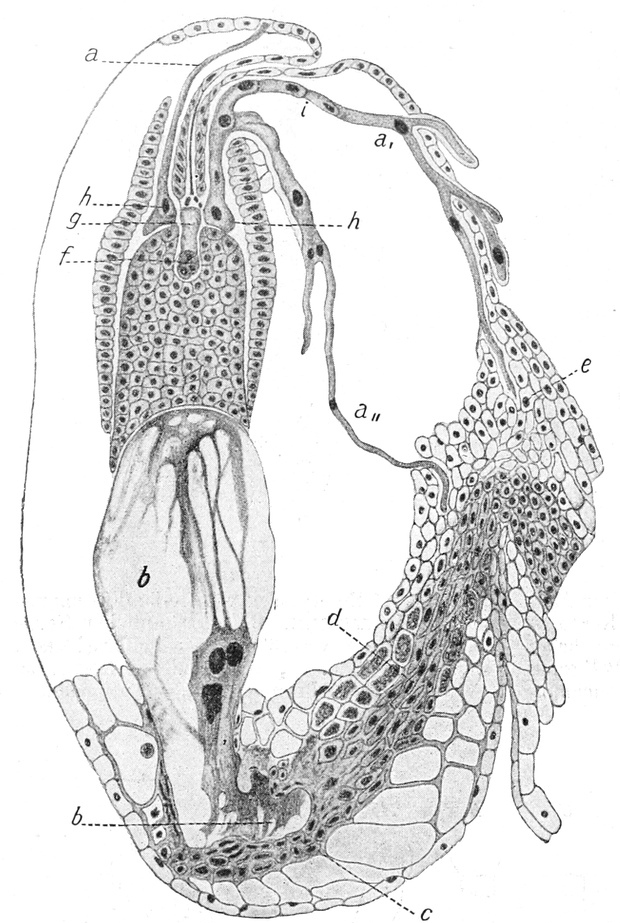
Fig. 574. Haustorien des befruchteten Embryosackes von Melampyrum nemorosum nach BALICKA-IWANOWSKA. b Haustorien des Chalazaendes, c Nährgewebe, d Leitbündelzweig, e Funiculus, f Embryo, g sein Suspensor, a, a′, a″ am Mikropylenende schon früh entstandene Haustorienschläuche, deren innere sich im Funiculus weit ausbreiten, zum Teil die Epidermis durchbrechen, h ihre Ansatzstellen, i Querwände im Schlauche.
Aus der befruchteten, alsbald mit fester Zellulosehaut bekleideten Eizelle, der Keimzelle, geht eine Zellreihe, der Vorkeim, hervor, welcher aus seiner Gipfelzelle die Hauptmasse des Embryos[467] entwickelt. Der Rest des Vorkeimes bildet den Embryoträger oder Suspensor. An der Grenze von Embryo und Suspensor liegt eine als Hypophyse (Fig. 572 D h) bezeichnete Zelle, die an dem Aufbau des unteren Embryoendes, der Radicula, in geringem Maße beteiligt zu sein pflegt. Je nach der Zugehörigkeit der betreffenden Pflanze zu der Unterklasse der Monokotyledonen oder Dikotyledonen ist die Gliederung des Embryokörpers verschieden. Die Dikotyledonen lassen zwei Keimblätter, Kotyledonen, am Scheitel des heranwachsenden Embryos hervorsprossen (Fig. 572) und bilden am Grunde des Spaltes zwischen beiden den Sproßvegetationspunkt, die Plumula; die Monokotyledonen dagegen besitzen der Regel nach einen scheitelständigen großen Kotyledon und einen seitlich gelegenen Vegetationspunkt (Fig. 573). Die Wurzel, Radicula, geht in beiden Fällen aus dem der Mikropyle zugekehrten Teile des Embryokörpers hervor; ihre Abgrenzung wird an älteren Embryonen deutlich.
Da der Embryosack nach eingetretener Befruchtung für den Aufbau des Keimlings, wie zur Füllung der Reservestoffbehälter im jungen Samen sehr erheblicher Zufuhr von Nährstoffen bedarf, so ist es verständlich, daß besondere Wege dafür eingeschlagen werden. Während im einfachsten Falle das Endosperm sich mächtig vergrößert und den ganzen Nucellus nach und nach verdrängt, sind häufig die Antipodenzellen, als der Chalaza nächst gelegene Teile, mit der Funktion der Embryosackernährung betraut. Sie erfahren dann starke Vermehrung und bisweilen eine mächtige Entwicklung. Aber auch andere Teile des Embryosackes selbst können zu langen Saugorganen, Haustorien, auswachsen, die bald aus der Mikropyle hervordringen, bald in der Chalazaregion das umliegende Gewebe weit durchziehen und das in vielen Fällen, besonders bei insektivoren und halbparasitisch lebenden Pflanzen, an diesem Orte vorher angehäufte, reiche Reservestoffmaterial der Makrospore zuführen (Fig. 574).
Völlig abweichende Entwicklung des Embryosackes und Embryos ist endlich bei Pflanzen zu finden, die unter ganz besonderen Lebensbedingungen vorkommen, wie die nur in reißenden Gebirgswässern tropischer und subtropischer Gebiete lebenden Podostemaceen. Hier kommt alles darauf an, daß während der kurzen Trockenzeit die Blütenanlage und -entwicklung auf Kosten vorher angesammelten Ernährungsmaterials vor sich gehe, und daß Bestäubung, Befruchtung und Samenentwicklung in abgekürztem Verfahren rasch durchlaufen werden, damit bei Wiederkehr des Wassers die reifen Samen ihre Keimungsbedingungen finden und der Vermehrung und Ausbreitung der Pflanzen dienen können.
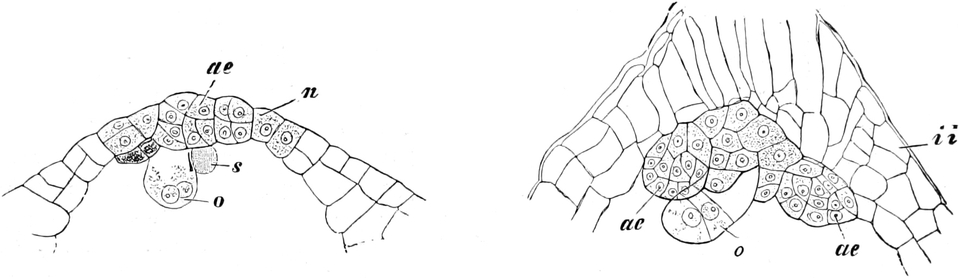
Fig. 575. Vegetative Sprossung aus dem Nucellus von Funkia ovata. (Apogamie.) n Nucellus, dessen Zellen am Scheitel Adventivkeime (ae) bilden, s Synergide, o aus der Eizelle entstandener Embryo mit Eikern und Spermakern, ii inneres Integument. Nach E. STRASBURGER.
In einzelnen Fällen ist Pflanzen die Fähigkeit sexueller Fortpflanzung mehr oder minder verloren gegangen[468] und durch eine oft nur bei genauerer Untersuchung als davon verschieden festzustellende anderweitige Vermehrung ersetzt worden. So unterlassen einige Pflanzen, wie Alchimilla, Thalictrum, Taraxacum, einige Urticaceen u. a. eine Reduktionsteilung bei der Anlage ihres Embryosackes. Daraus ergibt sich, daß die „Eizellen“ nicht befruchtungsfähig sind, sie sind keine normalen Geschlechtszellen, sondern besitzen vegetativen Zellcharakter. Derartige diploide „Eizellen“ sind nun ohne weitere Kernverschmelzung zur Fortentwicklung befähigt, und in Verbindung damit — oder als Ursache davon? — ist meist auch der Pollen unfruchtbar. Um die Übereinstimmung mit der zoologischen Terminologie zu bewahren, soll dies Verhalten, d. h. die Weiterentwicklung einer Eizelle ohne Befruchtung als „Parthenogenesis“ oder „jungfräuliche Zeugung“ bezeichnet werden.
Da nun neben der Weiterentwicklung solcher an Stelle von Eizellen stehender diploider Zellen auch Verdrängung normaler, haploider Eizellen durch vegetative Sprossungen, sog. „Adventivembryonen“ aus Nucelluszellen bekannt geworden ist, so mag diese Vortäuschung einer sexuellen Fortpflanzung die Bezeichnung „Apogamie“ erhalten. In einzelnen Fällen solcher Apogamie ist die Bestäubung der Narbe als Vorbedingung nachgewiesen worden, so bei Funkia (Fig. 575) und Citrus aurantium, während bei Caelebogyne ilicifolia und den Calycanthaceen ohne derartige in ihrer Beziehung nicht aufgeklärte Mitwirkung des Pollens die Adventivembryonen zustande kommen.
Unter „Aposporie“ endlich versteht man den völligen Ausfall der Sporenbildung oder aber Ausschaltung der Makrospore aus dem Entwicklungsgang; wenn z. B. bei Farnen aus diploiden Zellen des Blattrandes diploide Prothallien direkt hervorsprossen, oder bei Samenpflanzen Makrosporangien nicht entwickelt werden, sondern beliebige vegetative Zellen an ihre Stelle treten (Fig. 576).
Besonderes Interesse verdient nach den Untersuchungen von OSTENFELD und ROSENBERG die Gattung Hieracium, deren Samenanlagen die verschiedenartigsten Wege zur Embryobildung einschlagen können. Die Mehrzahl führt Tetradenteilung mit Chromosomenreduktion aus, aber nur einige solcher Samenanlagen gelangen in den Besitz eines normalen befruchtungsfähigen Embryosackes, weil dieser meist durch eine vegetative Zelle verdrängt wird. Eine derartige Verdrängung der Sporen — hier der Makrospore — wäre also Aposporie (Fig. 576). Außerdem werden auch Embryosäcke mit parthenogenetischer Eizelle ausgebildet.
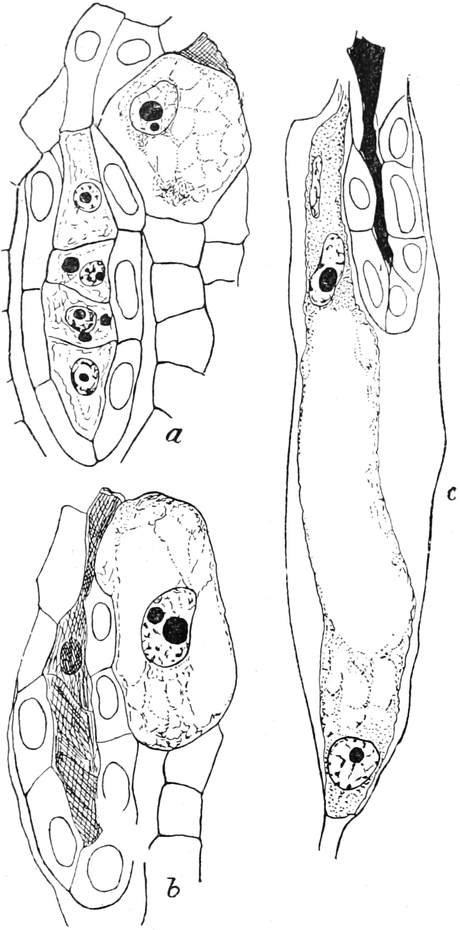
Fig. 576. Apospore Entstehung des Embryosackes von Hieracium flagellare. a Normale Makrosporentetrade, b und c ihre Desorganisation. Der diploide Embryosack geht aus einer bereits in a kenntlichen Integumentzelle hervor. Nach O. ROSENBERG aus A. ERNST 1918.
Der Samen.
Das ganze aus der Samenanlage nach stattgehabter Befruchtung entstehende Gebilde heißt Samen. Jeder Samen besteht aus dem mehr oder minder entwickelten Embryo, dem umgebenden Nährgewebe und der schützenden Schale. Diese geht in der Regel aus dem oder den Integumenten hervor, deren Zellen sich durch Verdickung, Verkorkung, Verholzung ihrer Wände zu einem wirksamen Schutzorgan gegen Austrocknen und Verletzungen für die darin schlummernde junge Pflanzenanlage umgestaltet haben. Ausbildung der Samenepidermis als Schleimzellen findet sich recht häufig, z. B. bei Quitten, Linum, zahlreichen Cruciferen u. a. Der Schleim dient den Samen als erstes Befestigungsmittel und gleichzeitig zum Festhalten einer bei der Keimung nötigen Wassermenge. Sonstige Strukturen der Oberfläche wie Haare, Stacheln usw. haben ebenfalls die Bedeutung, das Festhaften zu sichern, wenn sie nicht zur Samenverbreitung in Beziehung stehen.
Besondere morphologisch bemerkenswerte Stellen der Schale sind: 1. Mikropyle, 2. Nabel oder Hilum, d. h. Funiculusabbruchstelle, endlich 3. die Raphe. S. 464 ist gezeigt worden, daß Mikropyle und Nabel an den beiden Polen einander gegenüber liegen, falls die Samenanlage atrop war, daß sie nebeneinander sich befinden bei Samen, die aus anatropen Samenanlagen hervorgegangen sind, und daß nur diese letzteren eine Raphe, also eine die Chalaza mit dem Hilum verbindende, bei der Trennung des Samens vom Funiculus entstehende Narbstelle besitzen können. Kampylotrope Samenanlagen ergeben den anatropen ähnliche Samen, doch ist der Embryo hier gekrümmt.
In gewissen Fällen ist die Funktion der Samenschale dadurch verändert, daß die Fruchtschale selbst den Schutz des oder der Samen übernimmt, indem sie ihre Wand oder deren innerste Schicht zu Steinzellen umbildet, also zu einer Nuß oder Steinfrucht wird. In solchen Fällen, wie Mandel, Lorbeer, Kirsche, Pfeffer u. a., pflegt die Samenschale reduziert zu sein; ihre verschiedenen Zellschichten werden zusammengedrückt, und eine Verstärkung oder Veränderung der Wandungen unterbleibt, da die schützende Fruchtwand eine besondere Ausrüstung der Samenschale unnötig macht.
Das Nährgewebe ist bei den Gymnospermen, abgesehen von Gnetum, schon zur Zeit der Befruchtung als Prothallium ausgebildet (vgl. S. 487). Es füllt den Embryosack aus und dient der Ernährung des hineinwachsenden Embryo; die umgebenden Reste des Nucellus werden verdrängt, so daß das Prothallium bis an die Samenschale reicht. Seine Zellen sind mit Stärke, Fett und Eiweiß als Reservestoffen vollgepfropft, die zur Entwicklung des Embryo bei der nach Ablauf einer Ruheperiode eintretenden Keimung Verwendung finden.
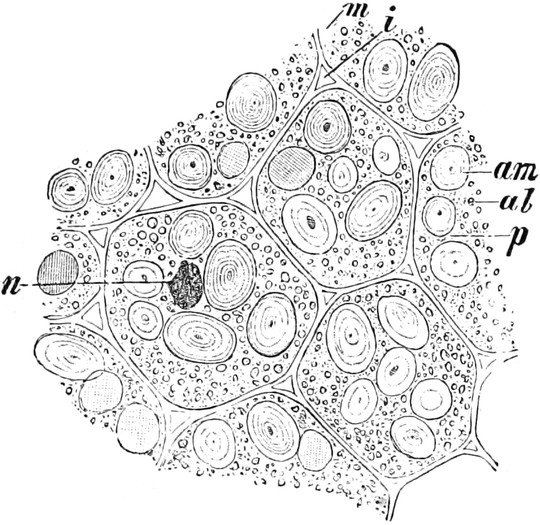
Fig. 577. Zellen der Erbsenkeimblätter mit Reservestoffen. am Stärkekörner, al Aleuronkörner, p Protoplasma, n Zellkern. Vergr. 160. Nach E. STRASBURGER.
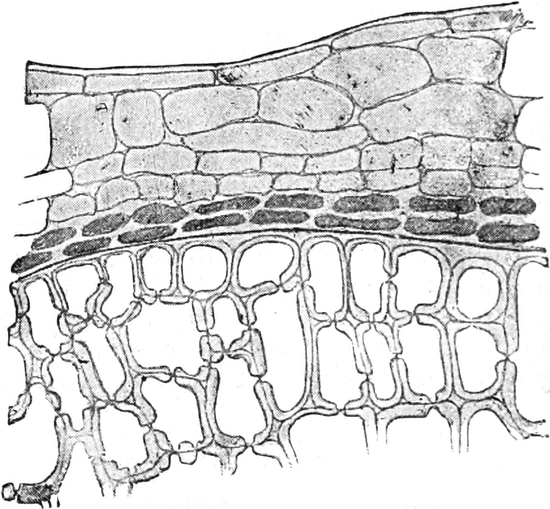
Fig. 578. Querschnitt des Colchicum-Samens. Innerhalb der Samenschale Reservezellulose des Endosperms.
Das Nährgewebe der Angiospermen (und von Gnetum) entsteht dagegen erst nach der Befruchtung der Eizelle aus der Vereinigung der beiden Polkerne zum sekundären Embryosackkern, der durch Aufnahme des zweiten Spermakernes den Anreiz zu weiterer Teilung erhält (vgl. S. 498). Seine Tochterkerne verteilen sich in der Regel rings im wandständigen Plasmaschlauch, und wenn die Zahl der Kerne eine hinreichend große geworden ist, zerfällt dieser Plasmakörper in zahlreiche Zellen, die für weitere Ausfüllung des ganzen Embryosackes mit Endospermgewebe sorgen.
Auch bei den Angiospermen verdrängt das Endosperm meist den ganzen Rest des Nucellus und häuft Reservestoffe, wie Stärke, fettes Öl, Aleuronkörner, in den Zellen an (Fig. 577) oder speichert in den sich stark verdickenden Wänden Zellulose als Reservezellulose (Fig. 578). In selteneren Fällen, so bei Piperaceen, Scitamineen usw., bleibt ein Rest des Nucellus vorhanden, der dann ebenfalls als Nährgewebe fungiert und den Namen Perisperm führt (Fig. 579 B). Wenn Lamellen des Perisperms oder auch der Samenschale in das Endosperm einwachsen, von dem sie in Farbe und Inhalt abweichen, so spricht man von ruminiertem Endosperm (Myristica Fig. 617, Areca).
In sehr zahlreichen Fällen aber, so bei den Leguminosen, Cruciferen u. a., wird nicht nur der Nucellus vom Endosperm, sondern auch dieses bereits vom Embryo völlig verdrängt, die Reservestoffe werden dann in den Keimblättern allein oder im ganzen Körper des Embryos aufgespeichert (Fig. 580).
Endlich ist noch eine meist wohl zur Samenverbreitung in Beziehung stehende Bildung, der Arillus, zu erwähnen, auch Samenmantel genannt. Er entsteht als fleischiger (Taxus) oder auch trockener (Pahudia javanica, Strelitzia reginae), meist lebhaft gefärbter Wulst am Funiculus und wächst an der Samenanlage bereits in ziemlich frühem Alter empor, indem er sie endlich mehr oder minder umhüllt (Fig. 581 D, 582). — Einen der Mikropyle benachbarten Auswuchs, der unter anderem besonders den Euphorbiaceen eigen ist, nennt man Caruncula (Fig. 581 C, B.).
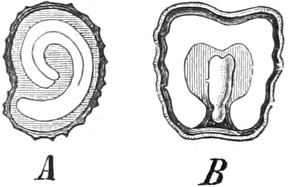
Fig. 579. A Samen von Hyoscyamus niger. Der dikotyle Keim in Endosperm eingebettet. B Samen von Elettaria cardamomum. Innerhalb der dunklen, von einem dünnen Arillus umhüllten Samenschale liegt zunächst weißes mehliges Perisperm, dann (schraffiert) ein öliges Endosperm und in der Mitte der monokotyle Keim. Nach BERG und SCHMIDT.
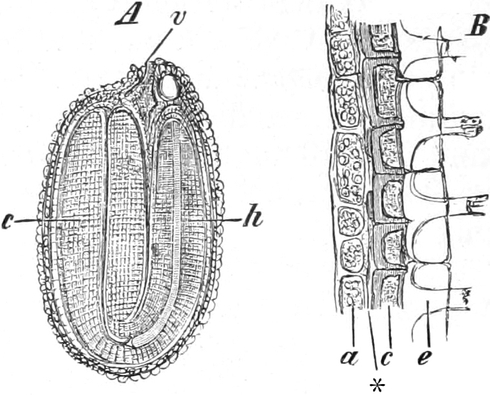
Fig. 580. Capsella bursa pastoris. A Längsschnitt durch den reifen Samen, h hypokotyles Glied, c Kotyledonen, v Leitbündel des Funiculus. Vergr. 26. B Partie aus dem Längsschnitt durch die Samenschale, e die gequollene Epidermis, c braune, stark verdickte Schicht, * zerdrückte Zellagen, a Aleuronschicht, einzige erhaltene Zellage des Endosperms. Vergr. 250. Nach E. STRASBURGER.
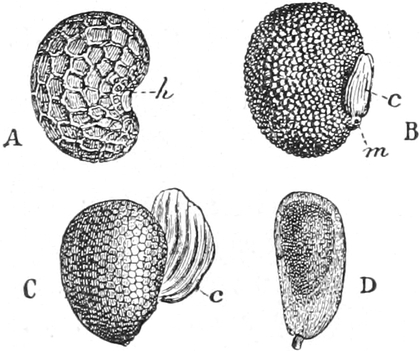
Fig. 581. A Samen von Papaver Rhoeas, h Hilum. B Samen von Corydalis ochroleuca, m Mikropyle, c Caruncula. C Samen von Chelidonium majus. D Samen von Nymphaea alba mit Samenmantel (Arillus). Nach DUCHARTRE.
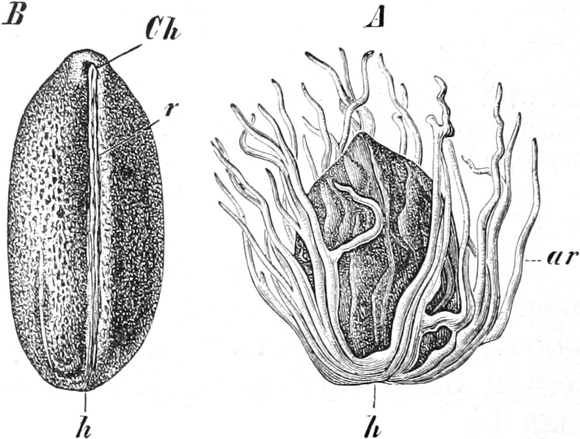
Fig. 582. A Myristica fragrans. Samen mit abgelöstem Arillus ar. B Myristica argentea. Samen nach Entfernung des Arillus. Ch Chalaza, r Raphe, h Hilum (Nabel). 3⁄4 nat. Gr. Nach O. WARBURG.
Die Frucht[469].
Doch nicht auf die Makrosporangien allein erstrecken sich die Folgen der Befruchtung, auch die Makrosporophylle, die Fruchtblätter, werden in Mitleidenschaft gezogen. Das aus ihnen, oft unter Mitwirkung des noch erhaltenen Kelches und der Blütenachse hervorgehende, außerordentlich verschieden gestaltete Gebilde, welches die Bedeutung hat, den in Entwicklung begriffenen Samen Schutz zu gewähren, nennt man die Frucht. Bei den Gymnospermen freilich, wo die Samenanlagen nackt auf den Fruchtblättern sitzen, hat man Früchte im eigentlichen Sinne nicht, da ja ein Fruchtknoten fehlt. So kann man bei Cycas, Ginkgo, Taxus, Podocarpus, Gnetum, Ephedra nur von Samen, nicht von Früchten sprechen. Wenn aber die Fruchtblätter nach der Befruchtung zusammenschließen, wie bei den verholzende Zapfen tragenden Gymnospermen und den Beerenzapfen von Juniperus, so ist ein der Angiospermenfrucht entsprechendes Gebilde gegeben, auf das man auch die Bezeichnung Frucht wird anwenden dürfen.
Eine große Mannigfaltigkeit in der Entwicklung der Angiospermenfrüchte läßt ja schon die verschiedenartige Ausbildung des Gynäceums erwarten. Denn die einfachste Definition der Frucht ist: der reife Fruchtknoten. Schwierigkeiten bereiten dabei die apokarpen Gynäceen.
Die zu vielen beisammenstehenden, aus apokarpen Gynäceen hervorgegangenen Einzelgebilde, z. B. der Rosaceen, sollen hier als Früchtchen, das ganze Gynäceum als Frucht (eventuell als Sammelfrucht) bezeichnet werden. So ist z. B. die Erdbeere eine durch Fleischigwerden des Blütenbodens entstandene Sammelfrucht, deren einzelne Körnchen je einem Früchtchen, und zwar einer Nuß, entsprechen; ebenso wäre beim Apfel nur das Kerngehäuse die Frucht, das fleischige Gewebe um das Gehäuse entstammt der um die Fruchtblätter ausgehöhlten und mit ihnen verwachsenen Blütenachse. Bei den Hagebutten hat man ebenso Sammelfrüchte vor sich; die Früchtchen sind die von dem fleischig gewordenen Blütenboden umhüllten harten Nüßchen (Fig. 583). Bei den aus synkarpen Gynäceen entstandenen Früchten kommt weiter die Ausbildung der Fruchtwand, des Perikarps, besonders in Betracht. Ihre äußere, mittlere und innerste Schicht werden als Exo-, Meso- und Endokarp unterschieden.
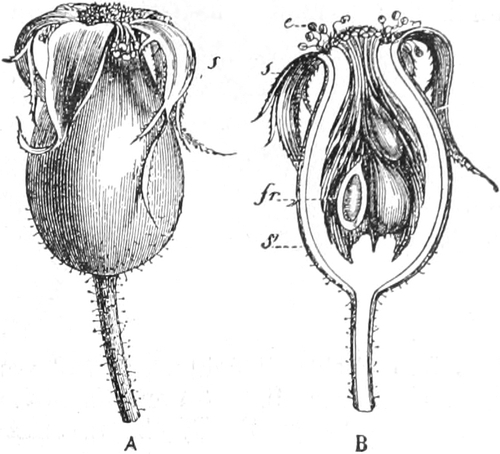
Fig. 583. Sammelfrucht von Rosa alba. Auf dem fleischigen Blütenboden s′ sitzen die erhaltenen Kelchblätter und die als Nüßchen ausgebildeten Einzelfrüchte fr. e Vertrocknete Staubblätter. Nach DUCHARTRE.
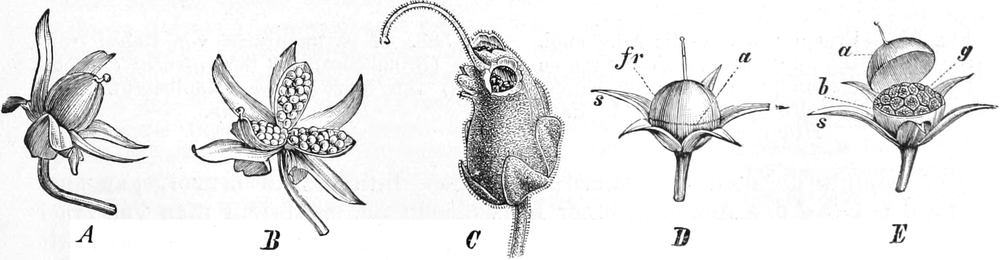
Fig. 584. Aufspringen der Kapselfrüchte. A Kapsel von Viola tricolor, vor dem Aufspringen. B Dieselbe nach dem Aufspringen. C Poricide Kapsel von Antirrhinum majus. Vergr. D Deckelkapsel von Anagallis arvensis, geschlossen. E Dieselbe geöffnet. Nach A. F. W. SCHIMPER.
Nach der Beschaffenheit dieses Perikarps ist folgende Einteilung der Fruchtformen aufgestellt:
1. Eine Frucht mit meist trockenem, bei der Reife sich öffnendem Perikarp heißt Kapsel (capsula) (Fig. 584). Geschieht die Öffnung durch Trennung der Karpelle in den Nähten, so ist die Kapsel septicid wie bei Colchicum (Fig. 812), tritt ein Längsspalt im einzelnen Fache ein, so heißt sie loculicid, z. B. Ornithogalum (Fig. 814), und werden bestimmt umschriebene Löcher dabei gebildet, so haben wir die poricide Kapsel, wie bei Papaver. Spezialfälle der Kapsel sind die Balgfrucht (springt an der Naht des einblätterigen Fruchtknotens auf [z. B. Aconitum, Fig. 520]), die Hülse (springt an der Naht und in der Mittelrippe auf), z. B. die Erbse, endlich die Schote der Cruciferen (öffnet sich durch Abspringen der Fruchtblätter von der falschen Scheidewand, an der die Samen hängen bleiben), wie bei Cheiranthus (Fig. 701 A).
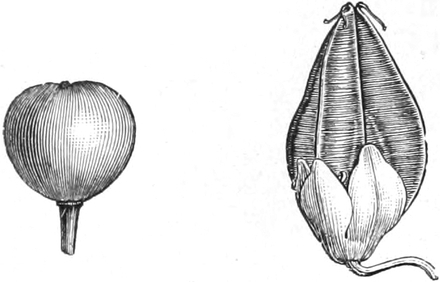
Fig. 585. Schließfrüchte. A Nuß von Fumaria officinalis. Vergr. 6. B Von Fagopyrum esculentum. Vergr. 2. Nach DUCHARTRE.
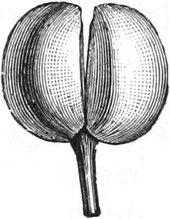
Fig. 586. Spaltfrucht von Galium Mollugo. Vergr. 6. Nach DUCHARTRE.
2. Alle andersgearteten Früchte, die sich bei der Reife nicht öffnen, kann man als Schließfrüchte der Kapsel gegenüberstellen. Nach der Ausbildung des Perikarps unterscheidet man dann:
a) Die Nuß (nux), eine Schließfrucht mit trockenem, hartem Perikarp, wie z. B. Haselnuß, Linde, Helianthus, Fumaria, Fagopyrum (Fig. 585).
b) Zerfällt eine trockene, aus mehreren Fruchtblättern bestehende Frucht bei der Reife in ihre Teilfrüchtchen, ohne daß diese sich öffnen, so wird sie Spaltfrucht (schizocarpium) genannt. Solche besitzen die Umbelliferen, auch Malva, Galium (Fig. 586).
c) Wird das Perikarp völlig und in allen Schichten fleischig, so ist die Frucht eine Beere (bacca), wie bei Vaccinium, Vitis, Physalis (Fig. 587).
d) Ist unter einem fleischigen Exokarp ein hartes, geschlossen bleibendes Endokarp vorhanden, so haben wir eine Steinfrucht (drupa). Prunus (Fig. 641) und Juglans (Fig. 671) sind bekannte Beispiele.
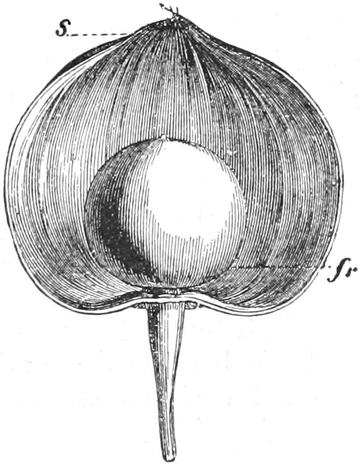
Fig. 587. Frucht von Physalis Alkekengi. Sie besteht aus der aus dem Fruchtknoten hervorgegangenen Beere fr, die vom herangewachsenen Kelch s umhüllt wird. Nach DUCHARTRE.
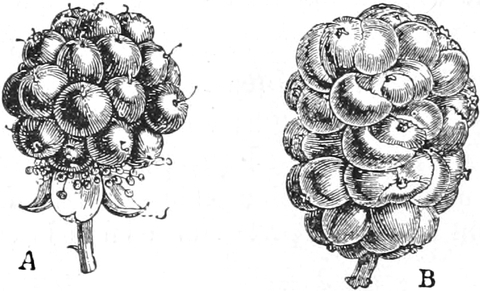
Fig. 588. A Sammelfrucht von Rubus fruticosus (Brombeere). B Scheinfrucht (Fruchtstand) von Morus nigra (Maulbeere). Nach DUCHARTRE.
Nimmt dagegen ein ganzer, aus einer Infloreszenz hervorgegangener Fruchtstand das Aussehen einer Einzelfrucht an, so spricht man von einer Scheinfrucht. Die Feige ist das bekannteste Beispiel einer solchen, wie sie überhaupt bei den Urticaceen und Moraceen besonders häufig sich findet. Der Vergleich einer Brombeere, die als Sammelfrucht aus einer Blüte hervorgeht, und einer Maulbeeren-Scheinfrucht wird die sehr große äußere Ähnlichkeit beider Gebilde erkennen lassen (Fig. 588).
Verbreitung der Samen[470].
Das wichtigste Mittel der Spermatophyten, ihre Art den unter gleichen Bedingungen mit ihnen zusammenlebenden Gewächsen gegenüber zu erhalten, ist möglichst reichliche Samenerzeugung; denn mit der Masse der Nachkommen steigt die Wahrscheinlichkeit, daß wenigstens einige davon ans Ziel gelangen. Aber die Zahl allein würde nur geringen Einfluß haben können, wenn alle Samen an den Ort ihrer Entstehung gebunden blieben; so ist neben der Zahl auch eine die Verbreitung begünstigende Ausrüstung von der größten Bedeutung, und Form wie Beschaffenheit von Frucht und Samen zeugen zur Genüge von dem tiefgreifenden Einfluß dieses Faktors auf ihre Ausgestaltung.
Als Verbreitungsmittel stehen den Samen der Pflanzen dieselben Agenzien zur Verfügung wie für die Pollenübertragung, also neben Luft- und Wasserströmungen die Tiere, und endlich menschliche Verkehrseinrichtungen; doch ist insofern ein Unterschied zu beachten, als die Pollenkörner fast durchweg von überaus geringem Gewicht und von minimaler Größe sind, während im Samen doch meist eine verhältnismäßig größere Menge von Reservestoffen abgelagert sein muß, die ihm ein höheres Gewicht und größere Masse verleihen. Trotzdem ist Samentransport durch Wind die alle anderen Möglichkeiten weitaus überwiegende Verbreitungsart.
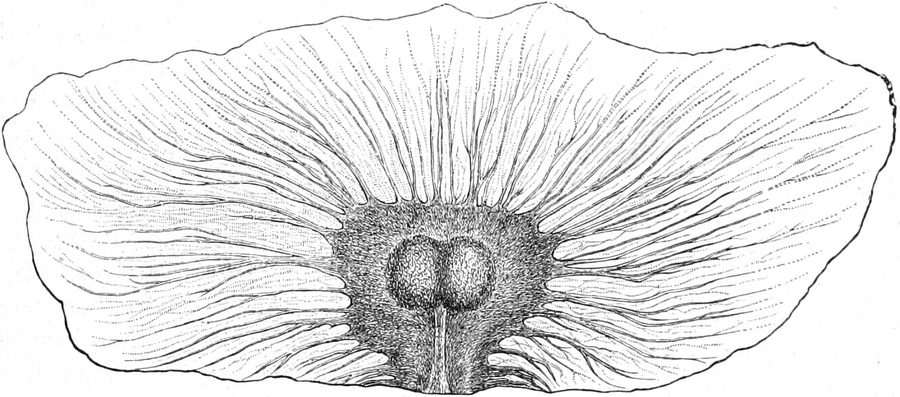
Fig. 589. Geflügelter Samen von Pithecoctenium echinatum in natürlicher Größe. Nach F. NOLL.
Die Ausrüstung der Samen für die Aussäung durch den Wind besteht vielfach nur in ihrem außerordentlich geringen Ausmaß an Größe und Gewicht; so zählen sie z. B. bei Stanhopea gewiß nach Millionen in jeder Kapsel, und ihr Gewicht ist für Dendrobium attenuatum auf etwa 1⁄200 mg bestimmt worden. So können diese Orchideen vermöge der Leichtigkeit und Menge ihrer Samen eine so hervorragende, nur von den mit ebenso leichten Sporen versehenen Farnen erreichte Rolle unter den epiphytischen Bewohnern feuchter Tropenwaldungen spielen. Weit häufiger ist eine Oberflächenvergrößerung und Darbietung einer Angriffsfläche für den Wind bei nicht ganz so leichten Samen zu beobachten, indem entweder die ganze Samenoberfläche kürzere oder längere Haare trägt, wie bei den Weiden (Fig. 691), Pappeln (Fig. 692) und der Baumwolle (Fig. 712), oder ein längerer Haarschopf dem Samen an einem Ende aufgesetzt ist, wie bei den Asclepiadaceen und Apocynaceen (Strophanthus, Fig. 754), vielen Gesneriaceen und Bromeliaceen. Ebenso häufig findet sich bei anderen Familien die Ausbildung einer richtigen Segelfläche aus einer äußerst dünnen und leichten Membran, wie sie bei unseren Fichten (Fig. 605) und Kiefern (Fig. 606) von der Fruchtschuppe abgespalten wird, bei Rhododendron, Bignoniaceen und bei Rubiaceen (Cinchona, Fig. 774) sich an jedem Samen ausbildet; nirgends wohl schöner als bei der Cucurbitacee Zanonia und der ihr fast gleichkommenden Bignoniacee Pithecoctenium echinatum, deren leichte seidig glänzende Flügel den fallenden Samen eine fast wagerechte Stellung einzunehmen erlauben und damit ein Hinschweben über weite Strecken bei dem leichtesten Luftzuge ermöglichen (Fig. 589).
Mannigfaltige andere Blüten- bzw. Fruchtorgane sind besonders in solchen Fällen, wo es sich um einsamige Früchte handelt, zu Flügeln oder Windsegeln umgestaltet worden, so die Kelchblätter bei Dipterocarpaceen, das große Hochblatt der Lindeninfloreszenz (Fig. 714), das Deckblatt mit den Vorblättern bei Carpinus (Fig. 684), meist aber die Fruchtknotenwandung, wie bei Betula (Fig. 683), Alnus, Ulmus (Fig. 693), Polygonaceen (Fig. 677 D). Acer (Fig. 736), Fraxinus (Fig. 749) oder den Früchtchen der Typhaceen, Eriophorum (Fig. 824), Dryas und Anemone (Fig. 630). Gleiche Bedeutung hat endlich ein Haarkelch (Pappus), der am oberen Rande der einsamigen Frucht entwickelt ist, wie bei Valerianaceen (Fig. 777) und Kompositen (Fig. 793 B, 791), besonders wenn er durch nachträgliche Verlängerung des Fruchtendes fallschirmähnlich wirken kann, wie bei Taraxacum (Fig. 794), Tragopogon u. a. Nach DINGLER beträgt die Fallverzögerung z. B. für die mit Haarschuppen versehenen Früchte von Cynara Scolymus bereits in der ersten Sekunde das Sechsfache im Vergleich zum freien Fall im luftleeren Raume, für Pinus silvestris das Siebenfache, für Pithecoctenium das Dreißigfache.
Weit beschränkter, aber für viele Gewächse von ganz hervorragender Bedeutung ist die Samen- oder Fruchtbeförderung durch Meeresströmungen. Die ganze Strand- und Küstenflora z. B. im Malayischen Archipel besteht nach SCHIMPERs Untersuchungen ausschließlich aus Pflanzen mit schwimmfähigen Früchten oder Samen, deren Ausrüstung dann stets mehr oder minder derjenigen der überall an Tropenküsten verbreiteten Kokosnuß (Fig. 806) entspricht. Ein dickes, aus grobem Fasergewebe bestehendes, von pergamentartigem Exokarp bedecktes Mesokarp erhält die Frucht schwimmfähig und schützt das spröde steinharte Endokarp vor dem Zertrümmertwerden beim Anprall an Felswände und Ufersteine. Derselbe oder doch ein sehr ähnlicher Bau findet sich bei Barringtonia speciosa und anderen Arten, bei Cerbera Odollam (Fig. 590), Terminalia Catappa, Nipa fruticans, den Pandanusarten und zahlreichen weiteren Vertretern auch der strauchigen und krautigen Dünen- und Strandflora; bei allen aber ist lange Schwimmfähigkeit ohne Beeinträchtigung ihrer Keimfähigkeit Bedingung für Verbreitung und Erhaltung der Art. Die Notwendigkeit beider Bedingungen zeigt z. B. die an allen Küsten des indischen Ozeans gelegentlich angespülte große Doppelfrucht von Lodoicea Seychellarum, die zwar schwimmfähig ist, aber den Transport auf dem salzigen Meere nicht zu ertragen vermag und so auf das geringe Verbreitungsgebiet einer kleinen Inselgruppe beschränkt bleiben mußte.
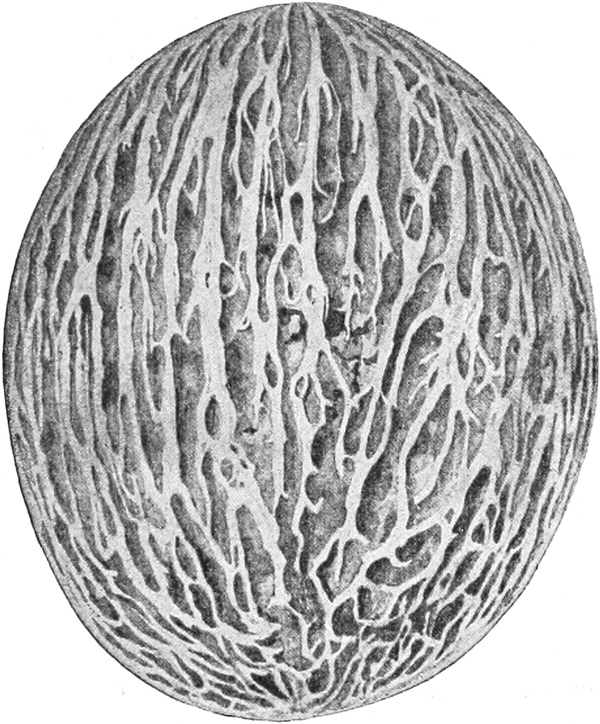
Fig. 590. Frucht von Cerbera odollam aus der Drift. Nach A. F. W. SCHIMPER. Hautartiges Exokarp und das Fleisch des Mesokarps fehlen, so daß das von groben Fasersträngen durchzogene, etwas abgeriebene Schwimmgewebe frei liegt.
Die Verbreitung von Früchten oder Samen durch Tiere beruht in der Regel darauf, daß fleischige Früchte Vögeln als Nahrung dienen, von denen die Samen unverdaut wieder abgegeben werden. In Mitteleuropa ist besonders der Holunder, Sambucus nigra, ein bekanntes Beispiel; für manche Samen scheint die Wanderung durch den Darm von Tieren die Keimfähigkeit zu bedingen. Besondere Anpassungen an die Samenverbreitung durch Tiere dürften in vielen Fällen die Arillusbildungen (vgl. S. 502) darstellen. Der Arillus von Taxus mit seiner intensiv roten Farbe, der einzige nicht giftige Teil des Baumes, wird von Amseln mit Vorliebe verzehrt, die roten Früchte von Evonymus europaea lassen geöffnet ihre mit hochrotem Arillus versehenen vier Samen hervorschauen, die von Rotkehlchen aufgesucht werden. Die Verbreitung der Muskatnüsse wird von einer großen Taubenart, die dem Arillus eifrig nachstellt, über die ganzen Molukken vermittelt. Endlich werden unsere Misteln im Winter, wenn wenig andere Nahrung zu finden ist, von Amseln und anderen Vögeln gern aufgesucht; die Samen der Misteln bleiben, vermöge ihres Viscinklebstoffes, beim Abwetzen des Schnabels an Zweigen haften und können dort zur Keimung gelangen. Die Verbreitung der Klettpflanzen Galium aparine, Lappa-Arten (vgl. Fig. 790 a), Bidens, Xanthium usw. durch das Wollkleid unserer Vierfüßler, die allgemeine Verbreitung der Wasserpflanzen von einem See oder Tümpel zu weit entfernten anderen durch die Wasservögel, die Verstreuung der Haselnüsse usw. durch Eichhörnchen bedürfen keiner weiteren Erklärung. Schließlich sei noch auf die Samenverbreitung durch Ameisen hingewiesen; diese Tiere werden durch ölreiche Anhängsel gewisser Samen und Früchte, wie die Caruncula, veranlaßt, sie in ihre Behausungen zu verschleppen.
Daß der Mensch durch Handel und Erwerbstätigkeit gewaltigen Einfluß auf die Verbreitung der Nahrungs- und Nutzpflanzen gewonnen hat, und daß mit diesen zugleich eine Menge der als Unkraut dazwischen lebenden Gewächse in ihren Samen über die bewohnten Teile der Erde verbreitet sind, ist durch zahlreiche Beispiele belegt und allgemein bekannt.
Die Keimung[471].
Samen, die alle Fährlichkeiten der Reise gut überstanden haben, bedürfen zur Keimung eines geeigneten Standortes. Kleinen Samen ist es nicht schwer, in Ritzen oder Rillen des Bodens Unterkunft zu finden, wo sie häufig, durch besondere Eigenschaften ihrer Oberfläche unterstützt, leicht festhaften bleiben. Größere Samen werden durch das fallende Laub die genügende Bedeckung erhalten. Die Früchtchen von Erodium und anderen Geraniaceen, von Avena sterilis, Stipa-Arten und sonstigen Gramineen gelangen mit Hilfe ihrer hygroskopischen Krümmungen in den Boden (vgl. S. 295, Fig. 276); rückwärts gerichtete Haare ihrer Oberfläche verhindern, daß sie wieder hinausgedrängt werden. Geotropisch abwärts wachsende Fruchtstiele (vgl. S. 304) sorgen für hinreichend tiefes Eingraben der Früchte bei Arachis hypogaea, Trifolium subterraneum, Okenia hypogaea u. a., negativer Phototropismus führt diejenigen von Linaria cymbalaria in die Ritzen der von der Pflanze bewohnten Mauern ein (vgl. S. 310).
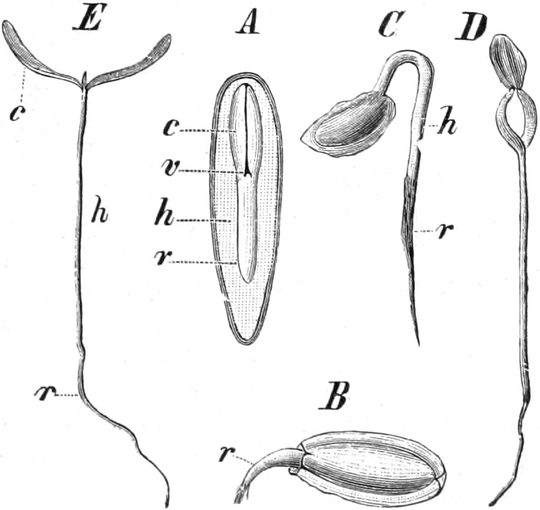
Fig. 591. Thuja occidentalis. Bei A medianer Längsschnitt durch den reifen Samen. In B bis E Keimungsstadien. h Hypokotyl, c Kotyledonen, r Radicula, v Stammvegetationskegel, A 5 mal, B und C 2 mal vergr. D und E nat. Größe. Nach H. SCHENCK.
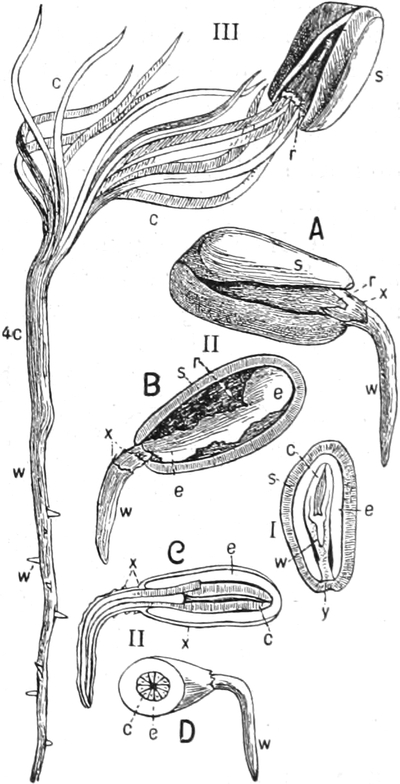
Fig. 592. Pinus pinea. Keimung nach J. SACHS. I Samenlängsschnitt. y Mikropylenende. II Keimungsbeginn. s Samenschale, e Endosperm, w Hauptwurzel, x der von ihr ausgestülpte Embryosack (zerrissen), r rote Samenhaut in der Schale. III Kotyledonen c verlassen den ausgesogenen Samen, hc Hypokotyl, w′ Nebenwurzeln.
Finden die so geborgenen Samen dann hinreichend Feuchtigkeit, so quellen sie zunächst stark auf. Damit geht ihnen freilich bereits ein Teil ihrer großen Unempfindlichkeit gegen alle Fährlichkeiten, speziell Temperaturextreme und Trockenheit, wieder verloren, die sie nur ihrem sehr geringen Wassergehalt verdankten. Die nächste Aufgabe für den Samen ist alsdann die Sprengung der Samenschale, die meist von der Wurzel besorgt wird. Da die Orientierung der Wurzelspitze stets gegen die Mikropyle gerichtet ist, wird diese Stelle geringeren Widerstandes von der Wurzelspitze durchbohrt und durch Herauswachsen der stärkeren Teile des Hypokotyls auseinandergesprengt (Fig. 591, 592). Die aus dem Samen austretende Wurzel wendet sich alsbald geotropisch abwärts und sorgt durch Wurzelhaare, die am Wurzelhals, d. h. der Grenze von Wurzelanlage und Hypokotyl, besonders lang und zahlreich hervorbrechen, für schleunige Befestigung des Keimlings im Boden. Inzwischen wächst das Hypokotyl nach und nach aus der Samenschale heraus, während die Kotyledonen zum großen Teil noch darin stecken und die Reste der Reservestoffe aufsaugen (Fig. 591, 593 a). So ist eine mehr und mehr bis an die Insertionsstelle der Keimblätter sich hinaufziehende scharfe Krümmung des Hypokotyls unausbleiblich, und die bei weiterem Aufwärtswachsen sich steigernde Spannung muß schließlich die Kotyledonen aus der Samenschale herausziehen, worauf der Keimling eine aufrechte Lage einnimmt und die Blätter zur Assimilation ausbreitet, um ein selbständiges Leben zu beginnen. Die Zahl der Keimblätter ist meist 2, bei einigen Gattungen der Koniferen aber wechselt sie von 3–∞ (Fig. 592).
Die häufigste Form der Keimung ist charakterisiert durch die oberirdische Ausbreitung der Kotyledonen, sie heißt epigäische Keimung. Man findet sie bei den kleineren Samen fast ausschließlich.
Die hypogäische Keimung findet sich hauptsächlich bei großsamigen Dikotyledonen, deren Keimblätter als Reservestoffbehälter dienen, wie Vicia faba, Pisum, Aesculus, Juglans, Quercus u. a. Ihr Charakteristikum besteht darin, daß die Kotyledonen, nachdem die Wurzel sich im Boden befestigt hat, in der Samenschale verbleiben, während das epikotyle Stammende sich zwischen den Keimblättern emporrichtet und die Folgeblätter entwickelt. So scharf morphologisch die Trennung beider Keimungsformen ist, so wenig ist dieser Unterschied systematisch verwertbar; schon innerhalb der Papilionaceen z. B. finden sich mannigfache Übergangsstufen; Phaseolus vulgaris keimt epigäisch, Phaseolus multiflorus hypogäisch.
Die Keimung monokotyler Samen weicht von den beschriebenen Fällen dadurch ab, daß nach der Hauptwurzel der Kotyledon mit seinem Scheidenteil aus dem Samen austritt (Fig. 593 b), während das andere Ende des Keimblattes sehr lange im Samen verbleibt und als Saugorgan die im Endosperm aufgespeicherten Reservestoffe dem Keimling zuführt, dessen erstes Blatt alsbald aus dem Scheidenteil des Kotyledons hervortritt. Sehr harte Samenschalen weisen besondere Vorkehrungen auf, welche das Austreten der Wurzel erleichtern. So finden sich an der Kokosnuß drei Keimlöcher vor, den drei Fruchtblättern entsprechend. Dasjenige, vor welchem der einzige zur Entwicklung gelangende Keimling mit seinem Wurzelende liegt, ist von nur sehr dünner Schale überdeckt, die beiden anderen dagegen sind fest verschlossen. Die harte Steinschale der Palme Acrocomia sclerocarpa (Fig. 594) besitzt an der der Wurzel vorgelagerten Stelle einen leicht herausschiebbaren Pfropf; in der ganzen Familie der Scitamineen sind ähnliche Deckel vorhanden.
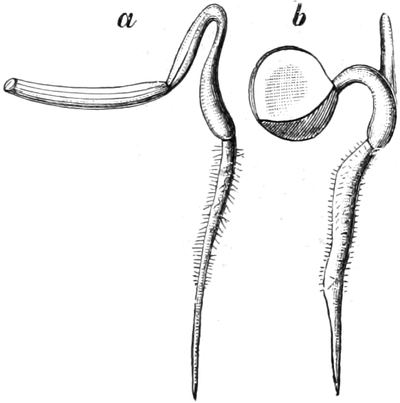
Fig. 593. Keimlinge von a Scorzonera humilis. b Iris pseudacorus. Nach G. KLEBS.
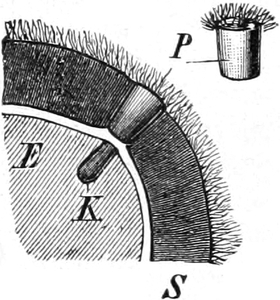
Fig. 594. Schnitt durch den oberen Teil der Frucht von Acrocomia sclerocarpa. S Steinschale, P Pfropf, K Keimling, E Endosperm. Nach E. PFITZER.
Ganz abweichende Verhältnisse, die hier nur kurz erwähnt werden können, zeigen die sog. „viviparen“ Pflanzen (Fig. 659). Die Viviparie stellt eine zum Standort in Beziehung stehende ökologische Anpassung der tropischen Mangrovepflanzen dar. Sie lassen ihre einsamigen Früchte bereits an der Mutterpflanze keimen, d. h. die Fruchtwandung wird vom mächtig heranwachsenden Keimling, der zunächst mit dem Radikularende aus der Mikropyle der Samenschale hervordringt, ebenfalls durchbrochen, und das ins Freie tretende Hypokotyl erreicht z. B. bei Rhizophora mucronata und Rh. mangle bis über 1 m Länge (vgl. Fig. 187 u. 659), so daß die vom Baum fallenden Keimlinge mit dem zugeschärften Wurzelende bei ihrem ansehnlichen Gewicht tief in den Schlamm eindringen, dort festen Fuß fassen und sich sogleich weiterentwickeln können.
Anordnung der Klassen, Ordnungen und Familien.
I. Klasse. Gymnospermae[472].
Die Gymnospermen sind nach morphologischen Gesichtspunkten (wie nach den Ergebnissen der Serodiagnostik (S. 524) nicht einheitlicher Abstammung. Vielmehr gehen die Cycadeen zwar auf die Cycadofilices (vgl. S. 461 Pteridospermeae) zurück, wohl vermittelst der Benettitaceae (vgl. S. 522, Cycadeoidea), aber die Coniferae würden auf die Lycopodinae ligulatae zurückzuführen sein, wobei die Deckschuppe dem Blatte, die Fruchtschuppe vielleicht der Ligula? entsprechen könnte. Die Abietineenzapfen bestehen demnach aus zahlreichen Makrosporophyllen, und jeder Zapfen entspricht einer Blüte, nicht einem Blütenstand, so daß sich ein direkter Anschluß an die spiralig aufgebauten Magnoliaceenblüten ergibt.
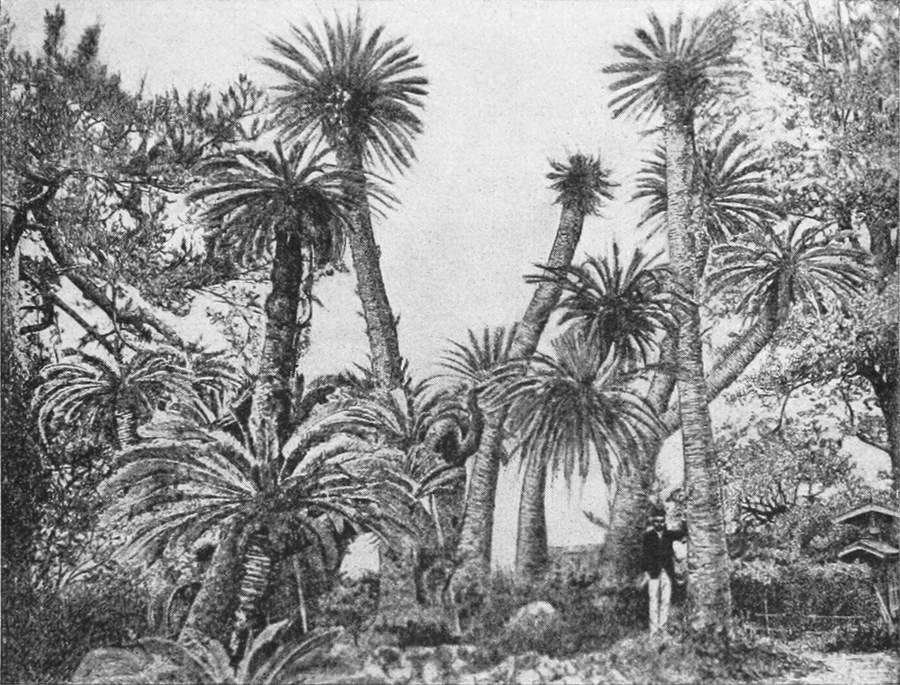
Fig. 595. Cycas revoluta-Gruppe aus einem Tempelgarten in Japan. Die mächtigsten Stämme in Japan von 8 m Höhe und 2 m Umfang. Nach E. R. WIELAND.
Die 1. Ordnung, Cycadinae, enthält als einzige Familie die Cycadaceae. Die Cycadeen sind den Tropen und Subtropen angehörige Holzgewächse. Und zwar ist Cycas in Asien heimisch, Macrozamia und Bowenia in Australien, Encephalartos und Stangeria gehören Afrika an; dagegen besitzt Amerika die Gattungen Dioon, Zamia, Ceratozamia und Microcycas. Den Habitus eines Cycadeenhaines gibt Fig. 595 wieder, wo zahlreiche ansehnliche Exemplare von Cycas revoluta, darunter auch verzweigte, beisammenstehen.
Der Stamm ist mit Dickenwachstum begabt, er bleibt entweder unverzweigt oder stellt ein Sympodium dar und bringt große, gefiederte Laubblätter von mehrjähriger Dauer und lederiger Beschaffenheit in gipfelständiger Rosette abwechselnd mit schuppenförmigen Niederblättern hervor. Diese bekleiden gemeinsam mit den Basen der abgeworfenen Laubblätter die Oberfläche des säulenartigen oder knollenförmigen Stammes. In allen Teilen der Pflanzen finden sich Schleimgänge. Die Leitbündel sind kollateral, führen jedoch im Gefäßteil nur Tracheïden.
Die Blüten der Cycadaceae sind diözisch verteilt. Fig. 596 stellt eine blühende weibliche Pflanze von Cycas revoluta dar. Der Vegetationskegel des Stammes bildet hier abwechselnd Laubblätter und Makrosporophylle. Die Laubblätter sind in der Jugend gleich denen der Farne eingerollt. Ein Sporophyll ist in Fig. 596 a genauer wiedergegeben. Es zeigt noch die gefiederte Form der Laubblätter, entbehrt aber des Chlorophylls und ist dicht mit braunen Haaren bedeckt. Der Basis genähert trägt es zwei bis acht randständige Makrosporangien an Stelle von Fiedern. Jede blühbare weibliche Cycaspflanze durchläuft also in regelmäßigem Wechsel eine vegetative und eine Blütenperiode; die Blüte, von der Gesamtheit der Sporophylle dargestellt, wird stets durchwachsen, da dem Stamme die Fähigkeit sich zu verzweigen im allgemeinen fehlt. Dagegen vereinigen die männliche Cycaspflanze und die übrigen Cycadaceae ihre Sporophylle in terminalen Zapfenblüten von oft riesigen Dimensionen; eine Seitenknospe des Stammes schiebt sodann diese terminalen Blüten beiseite und setzt in sympodialem Aufbau das Wachstum in ursprünglicher Richtung fort.
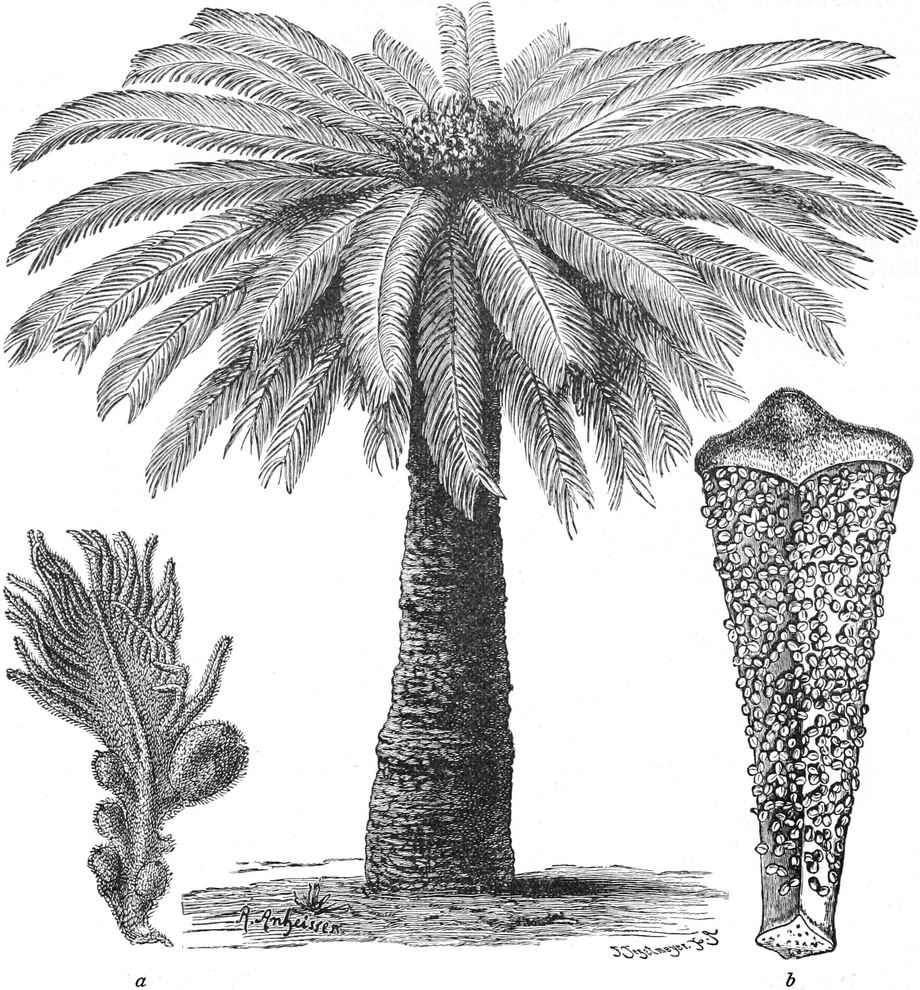
Fig. 596. Cycas revoluta, weiblich, blühend. Nach einer Photographie. a Makrosporophyll (Fruchtblatt) von Cycas revoluta (nach SACHS). b Mikrosporophyll (Staubblatt) von Cycas circinalis (nach RICHARD).
Derartige Zapfen bestehen aus zahlreichen Sporophyllen, die in spiraliger Stellung an der Achse aufeinander folgen. Mikrosporophylle sind auf ihrer Unterseite mit zahllosen Mikrosporangien übersät, wie Fig. 596 b für Cycas darstellt. Makrosporophylle der übrigen zapfenblütigen Cycadaceae beschränken die Zahl der Makrosporangien auf je zwei, welche dem Cycas gegenüber erheblich abgeänderten Sporophyll am Rande eingefügt werden, wie Fig. 597 für Ceratozamia robusta zeigt; Entwicklungsgeschichte vgl. S. 485.
Der einzige Vertreter der 2. Ordnung, Ginkgoinae, die auf die Familie der Ginkgoaceae beschränkt ist, ist der aus Japan stammende, bei uns jetzt vielfach angepflanzte Baum Ginkgo biloba. Ginkgo biloba verliert jährlich seine langgestielten, ein- bis mehrfach zweilappigen, Adiantum ähnlichen Blätter. Bei diözischer Blütenverteilung sind die hüllblattlosen Staubblätter zahlreich an einer gestreckten Achse vereinigt, ihre Mikrosporangien besitzen ein „Endothecium“ (S. 470). Die Makrosporangien stehen zu zweien auf dem Gipfel kurzer Sprosse in einer kragenartig die Sporangien umgebenden Wucherung, dem Sporophyll (Fig. 598). Entwicklungsgeschichte vgl. S. 485.
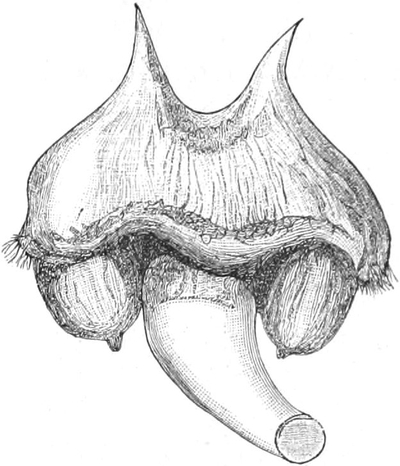
Fig. 597. Ceratozamia robusta. Ein Makrosporophyll mit zwei Makrosporangien. Nach K. GOEBEL.
In der 3. Ordnung Coniferae, den Koniferen, sind die unter dem Namen der „Nadelhölzer“ bekannten Pflanzen vereinigt. Stattliche Gewächse von baumförmigem oder strauchartigem Habitus, mit holzigen Stämmen versehen, zeichnen sie sich durch den gemeinsamen Charakter kleiner, ungeteilter, fester, flacher oder kantiger, meist xerophil gebauter Nadelblätter von meist mehrjähriger Dauer aus, so daß Nadelhölzer, bis auf wenige Vertreter, wie die Lärche, zu der „immergrünen“ Vegetation zählen. Eine reiche Verzweigung in Lang- und Kurztriebe typischer Form findet sich bei den Gattungen Pinus, Larix und Cedrus. In allen Fällen aber sind Hauptstamm und Seitenzweige durch Wachstumsrichtung und -stärke scharf unterschieden, wenigstens an jüngeren Individuen. Im Alter nehmen die Bäume oft Schirmform an.
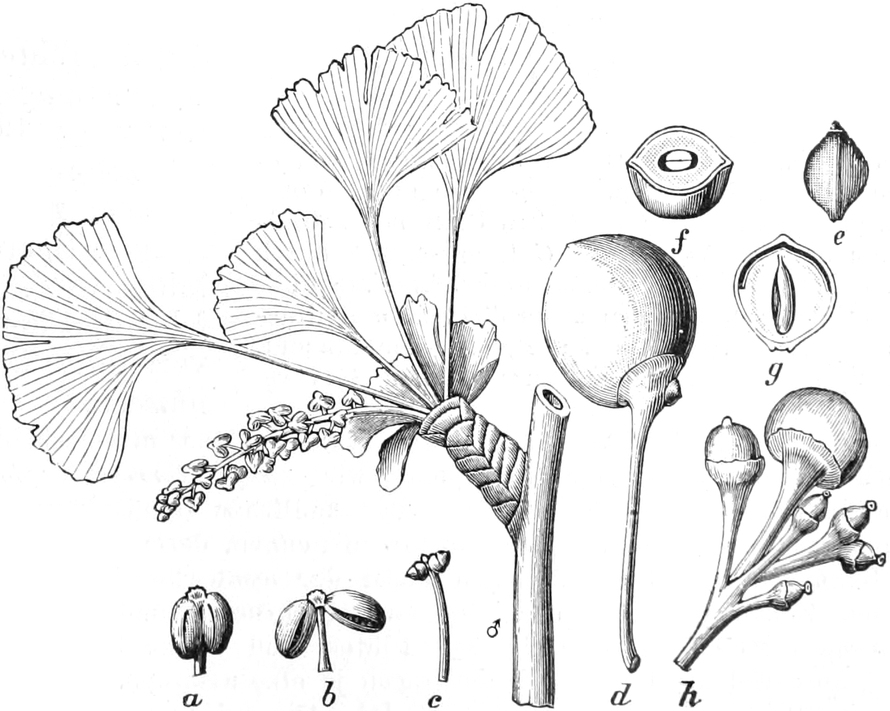
Fig. 598. Ginkgo biloba. Männlicher Kurztrieb mit Blüte und jungen Blättern. a, b Staubblätter, c weibliche Blüte, d Frucht, e Steinkern daraus, f derselbe im Querschnitt, g im Längsschnitt nach Ausbildung des Embryo, h weibliche Blüte mit ausnahmsweise zahlreichen gestielten Samenanlagen. — Männliche Blüte und c in nat. Gr., d ein wenig verkleinert, die übrige Figur vergrößert. Nach L. C. RICHARD, a–d nach A. W. EICHLER.
Der Mangel an Tracheen im Holz, wie in den Gefäßteilen der jungen Pflänzchen, ist in anatomischer Hinsicht charakteristisch. Große Tracheïden mit eigenartigen Hoftüpfeln besonders auf den radialen Längswänden vertreten ihre Stelle und bilden Holzkörper von außerordentlicher Gleichmäßigkeit. Der Mehrzahl der Koniferen ist reicher Harzgehalt in allen Teilen eigen.
Die Nadelhölzer sind im Gegensatz zu den Cycadinae meist Bewohner gemäßigter Zonen, auch gehören sie mit zu den am weitesten gegen den Pol vordringenden Baumformen. Wo sie innerhalb der Wendekreise auftreten, handelt es sich meist um Arten, die hoch ins Gebirge hinaufsteigen.
Nach den Verschiedenheiten ihrer Blütenbildung werden die Koniferen auf zwei Familien verteilt.
Die Taxaceae sind charakterisiert durch weibliche Blüten mit einem oder wenigen Makrosporangien, die in der Regel mit einem Arillus versehen sind. Diese Blüten pflegen nicht zapfenförmig zu sein. Die Mehrzahl der Vertreter hat diözische Geschlechtsverteilung.
Die Pinaceae dagegen führen mehrere Samenanlagen in jeder weiblichen Blüte, welche aus zahlreichen, an einer Spindel zu Zapfen vereinigten Sporophyllen gebildet wird. Ein Arillus fehlt, und die Geschlechtsverteilung ist meist monözisch.
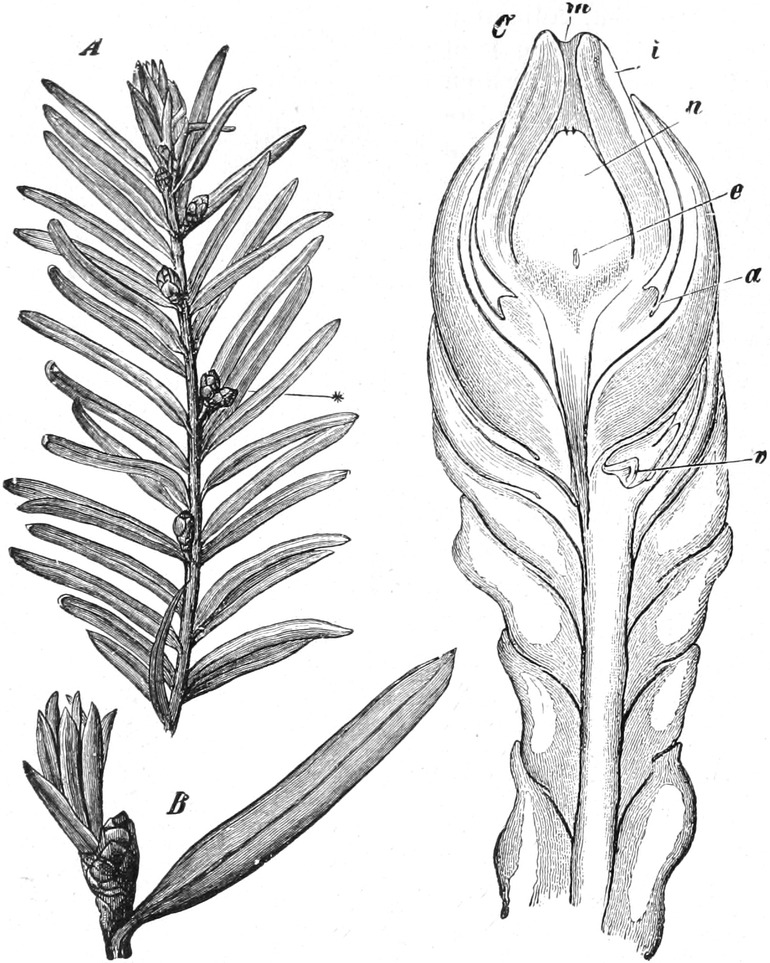
Fig. 599. Taxus baccata. A Habitusbild eines Zweiges mit weiblichen Blüten, bei * zwei Samenanlagen an demselben Primansprößchen. Nat. Gr. B Ein Blatt mit achselständiger Samenanlage. Vergr. 2. C Längsschnitt durch die gemeinsame Mediane des Priman- und Sekundansprößchens, v Vegetationskegel des Primansprößchens, a Arillusanlage, e Embryosackanlage, n Nucellus, i Integument, m Mikropyle. Vergr. 48. — Nach E. STRASBURGER. Giftig.
Familie Taxaceae. Die Angehörigen der Taxaceen sind in verschiedenen kleinen Gattungen teils auf der nördlichen Hemisphäre, wie Taxus, Torreya, Cephalotaxus, vorwiegend aber in zahlreichen Gattungen auf der südlichen Hemisphäre verbreitet. Als wichtigste von diesen ist die Gattung Podocarpus zu nennen, deren zahlreiche Arten sich als stattliche Bäume in den Bergwaldungen meist der asiatischen Tropen finden und in den gemäßigten Zonen Ostasiens und der australisch-neuseeländischen Inselwelt eine weite Verbreitung besitzen. Ihre weiblichen Blüten sind kleine Sprosse, deren Sporophylle fleischig anschwellen; 1 oder 2 davon tragen je eine anatrope, von fleischig werdendem Arillus umhüllte Samenanlage auf dem Gipfel. Die auf demselben oder auf einem anderen Individuum vorhandenen männlichen Blüten stellen kleine aufgerichtete Zäpfchen dar, die mit zahlreichen Mikrosporophyllen besetzt sind. Jedes Sporophyll trägt unterseits zwei Sporangien, deren Mikrosporen mit Flugblasen versehen sind.
Die Eibe, Taxus baccata, ist die einzige in Europa vorhandene Art der Familie (Fig. 599, 600). Jetzt vielfach in Anlagen gepflanzt, hat sie früher eine große Verbreitung als immergrünes Unterholz unserer Wälder besessen. Einzelne mächtige Exemplare finden sich in Nord- und Mitteldeutschland noch vor, größere Bestände sind wohl nur spärlich erhalten geblieben. Der Baum erreicht eine Höhe von etwa 10 m. Seine Zweige sind sämtlich als Langtriebe ausgebildet und tragen an den aufstrebenden Hauptästen allseitig, an den wagerecht ausgebreiteten Seitenzweigen nach rechts und links gescheitelt, flache Nadelblätter von mehrjähriger Dauer. Der Baum ist diözisch. Die Blüten sitzen auf der Unterseite der Zweige und entstehen als Achselsprosse vorjähriger Nadeln. Männliche Blüten werden von einer Anzahl Schuppenblätter am Grunde umhüllt und enthalten etwa 10 schildförmige Staubblätter, mit je 5–9 Pollensäcken (Fig. 600 A). Bei ihrer Öffnung wird die Außenwand nach Lösung an der Basis und den Seiten zurückgeschlagen; so ähnelt das Staubblatt einem nach unten aufgespannten Schirm, in dessen Höhlung die ausgefallenen Pollenmassen liegen bleiben, bis der Wind sie entführt. Die Pollenkörner von Taxus entbehren der Flugblasen. Weibliche Blüten (Fig. 599) entstehen meist einzeln als sekundärer Achselsproß der obersten Schuppe eines primären Triebes, dessen zur Seite gedrängter Vegetationskegel sich nicht weiter entwickelt. Sie bestehen aus einer einzigen atropen Samenanlage, die von einem Integument umhüllt wird. Die den Gymnospermen eigene Tropfenausscheidung aus der Mikropyle ist hier besonders gut zu beobachten. Während der Samenentwicklung bildet sich ein fleischiger Arillus aus, der als hochroter Becher den reifen Samen umgibt. Das Laub und der Samen, nicht aber der ihrer Verbreitung durch Vögel dienende süße Arillus, sind giftig.
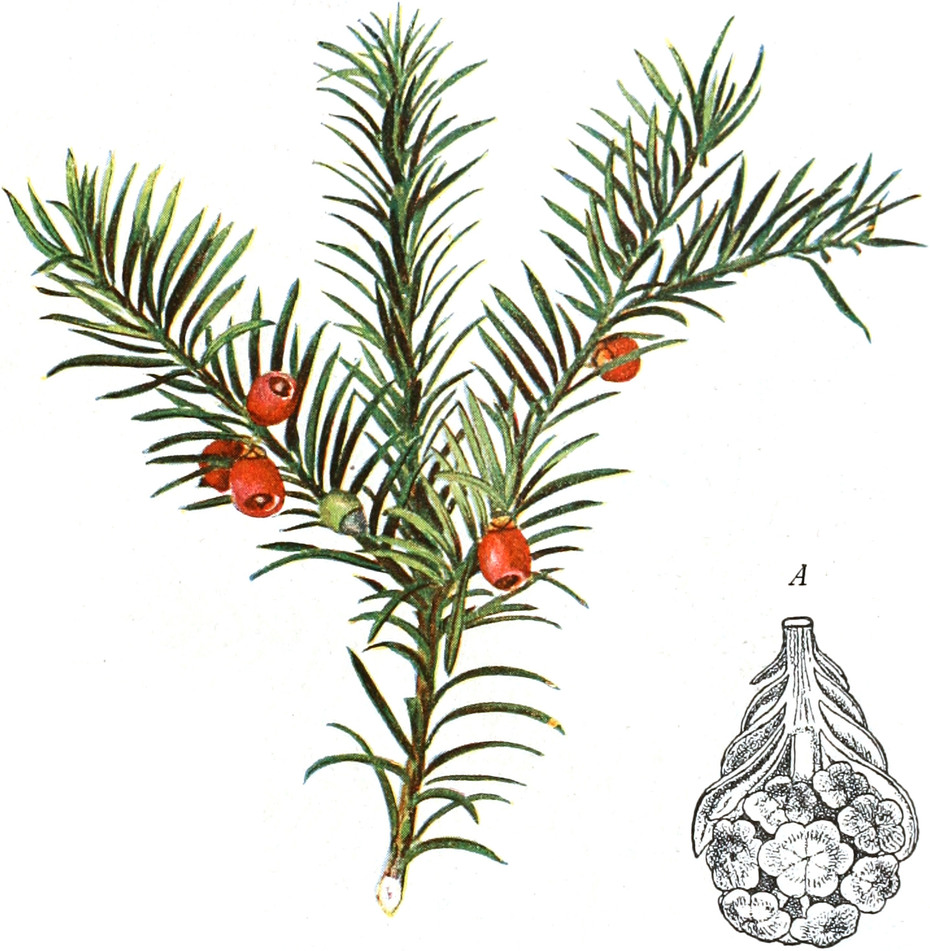
Fig. 600. Taxus baccata mit Früchten. 1⁄2 nat. Gr. A Männliche Blüte nach RICHARD. — Giftig.
Familie Pinaceae. In der Familie der Pinaceen sind die wichtigsten Nadelholzbäume enthalten, die sich nach Verschiedenheiten der Blattstellung und Lage der Samenanlagen auf zwei Unterfamilien verteilen lassen. Alle Formen mit gegenständigen oder quirlständigen Blättern fassen wir als Cupressineae zusammen. Diesen kommt auch eine aufrechte Stellung ihrer Samenanlagen zu.
Alle Formen mit wechselständigen Blättern bilden die Unterfamilie der Abietineae, welche fast ausnahmslos umgewendete Samenanlagen besitzen.
Unterfamilie Cupressineae. Die Cupressineen haben teils quirlständige Nadeln, wie unser Wacholder (Fig. 601), teils schuppenförmige und dann dekussiert stehende Blätter wie Thuja-Arten und Juniperus sabina (Fig. 602). Doch zeigen die Keimpflanzen von Thuja noch nadelförmige Blätter, und einzelne Zweige der schuppig beblätterten Juniperus-Arten fallen ebenfalls häufig auf Nadelblätter und dreizählige Blattquirle zurück, so daß man diese als ältere Blattform aller Cupressineen zu betrachten berechtigt ist. Taxodium distichum trägt zweizeilig beblätterte hinfällige Kurztriebe.
Die Blüten der Cupressineen sind monözisch, nur bei Juniperus meist diözisch verteilt. Die männlichen sind bei Juniperus communis blattachselständig. Der kleine Sproß beginnt mit einer Anzahl anliegender Schuppenblätter (Fig. 601 Aa) und endet mit einigen Wirteln von schildförmigen Sporophyllen c, die auf der Unterseite je 2 bis 4 Mikrosporangien (d) tragen, welch letztere sich mit einem vertikalen, in Längsrichtung des Sporophylls verlaufenden Riß öffnen. Die Stellung der weiblichen Blüten ist die gleiche. Auf die Hülle der Schuppenblätter (Fig. 601 B) folgt ein Quirl Fruchtblätter (Fig. 601 Cb); jedes trägt schräg vor der Mittellinie eine aufrechte Samenanlage c. Nach der Befruchtung geht hauptsächlich aus dem Grunde der Sporophylle fleischiges Parenchym hervor, welches die drei Makrosporangien emporhebt und sich zwischen sie eindrängt, ohne jedoch den freien Raum ganz auszufüllen. Die drei Fruchtblätter wachsen dann über den Samenanlagen völlig zusammen. Eine Verwachsungsnarbe auf dem Scheitel kennzeichnet noch an der reifen Beerenfrucht die Grenzen der Fruchtblätter. Übrigens ist Juniperus die einzige Gattung der Cupressineen mit Beerenfrüchten; die anderen wie Cupressus, Thuja, Taxodium tragen Zäpfchen und führen ihre Samenanlage auf einer kaum abgegliederten Wucherung der Zapfenschuppen.
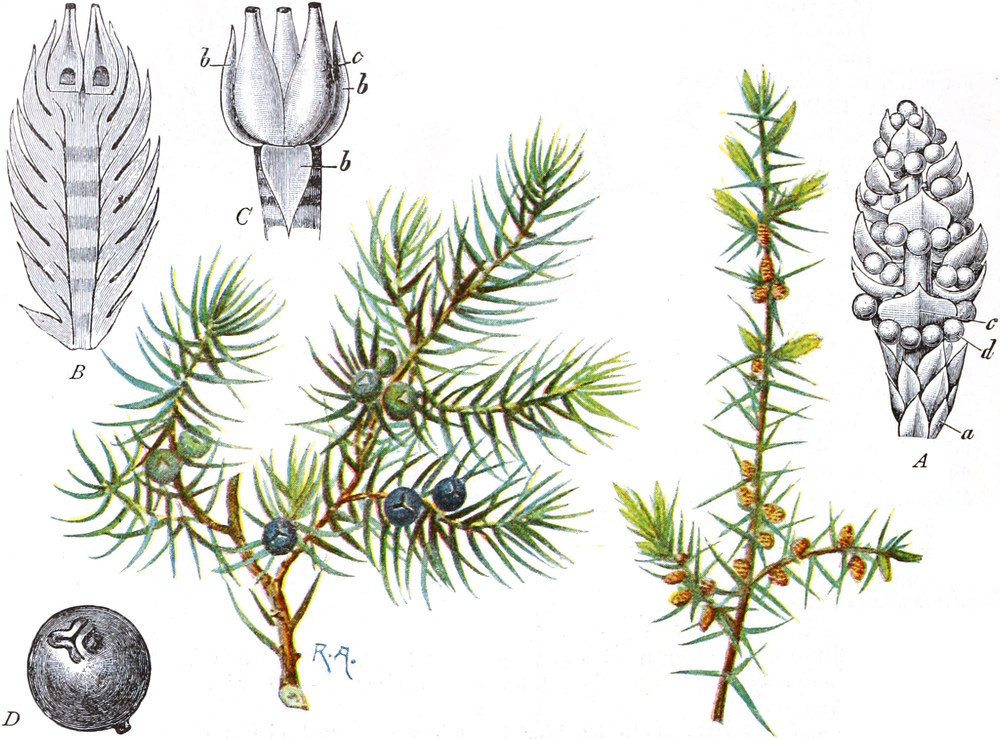
Fig. 601. Juniperus communis. 2⁄3 nat. Gr. — Zweig mit Früchten und Zweig mit männlichen Blüten. — Offizinell. A Männliche Blüte, B fertiler Zweig mit weiblicher Blüte, C weibliche Blüte, ein Fruchtblatt zurückgeschlagen, D Frucht nach BERG und SCHMIDT.
Juniperus communis, der Wacholder, ist ein auf der ganzen nördlichen Hemisphäre verbreiteter, stellenweise sehr häufiger Strauch. Juniperus sabina, der Sadebaum (Fig. 602), findet sich in den Alpen und sonstigen mittel- und südeuropäischen Gebirgen als niederliegender Strauch. Die Zypresse, Cupressus sempervirens, ist im Mittelmeergebiet zu Hause. Thuja-Arten, Lebensbäume genannt, werden als Ziersträucher und Bäume bei uns angepflanzt. Das sommergrüne Taxodium distichum bildet ausgedehnte Sumpfwälder an den Nordküsten des mexikanischen Golfes von Florida bis Galveston, während das immergrüne Taxodium mexicanum auf dem mexikanischen Hochplateau weit verbreitet ist, in zum Teil mächtigen Exemplaren, wie „dem großen Baum von Tule“, der von HUMBOLDT auf 4000 Jahre geschätzt, bei 50 m Höhe 44 m Stammumfang besitzt (Fig. 603).
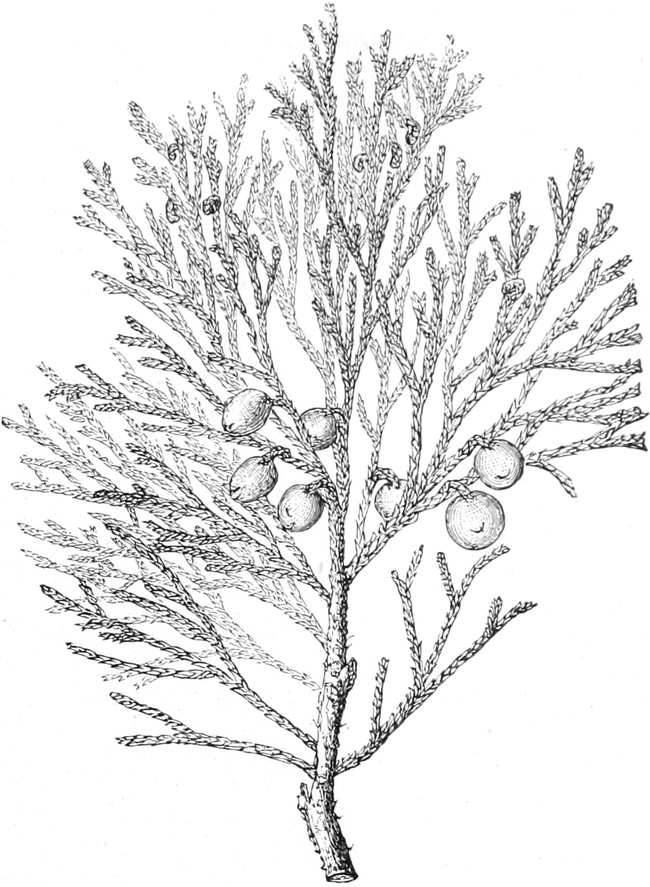
Fig. 602. Zweig von Juniperus Sabina mit Früchten. — Offizinell und giftig. Gez. H. SCHENCK.
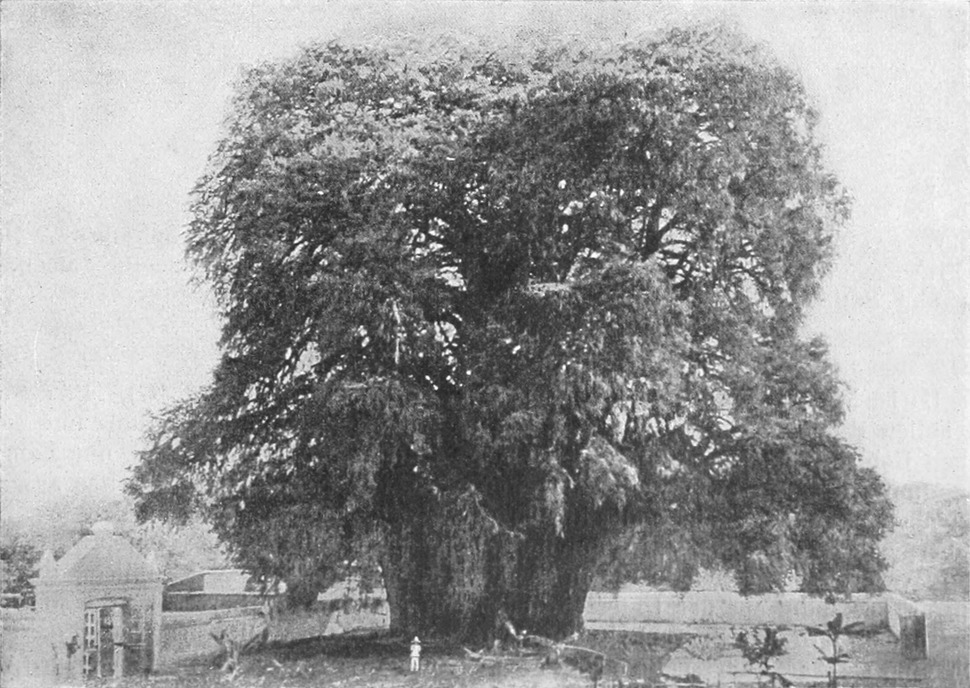
Fig. 603. Taxodium mexicanum auf dem Kirchhofe Sa. Maria de Tule bei Oaxaka. Der große Baum von Tule, einer der ältesten Bäume der Erde. Nach einer Photographie.
Unterfamilie Abietineae. Die männlichen Blüten (vgl. S. 479) bestehen lediglich aus einer am Grunde mit Schuppenblättern besetzten Achse, an der zahlreiche Staubblätter sich finden, die auf ihrer Unterseite Pollensäcke tragen. Ihre Zahl ist bei den Abietineen im engeren Sinne auf zwei beschränkt, sie steigt bei Agathis und Araucaria auf 5–15. Die Mikrosporen haben meist Flugblasen. Weibliche Blüten stellen durchweg Zapfen dar, sie bestehen also aus einer Achse und Zapfenschuppen, den Makrosporophyllen. Bei Agathis und Araucaria trägt jede Schuppe eine anatrope Samenanlage an der Basis. — Ähnlich liegen die Verhältnisse bei Sequoia und Sciadopitys, deren Schuppen aber stets mehrere (4–9) anatrope Samenanlagen auf einem sich schärfer abhebenden Auswuchs tragen. Bei den Abietineen im engeren Sinne ist die Trennung dieses Auswuchses von der Schuppe weiter durchgeführt; man findet eine zweite, mit der Zapfenschuppe am Grunde verbundene innere Schuppe, welche die beiden, stets anatropen Samenanlagen trägt. Die äußere Schuppe heißt Deckschuppe, die innere Fruchtschuppe (Fig. 604 C, 605 5). Die Fruchtschuppe wird erheblich stärker ausgebildet. Sie ist der verholzende, die Samenanlage schützende Teil. Schon zur Zeit der Blüte wird meist die Deckschuppe von der Fruchtschuppe überdeckt und erst bei genauer Untersuchung kenntlich. Doch gibt es einige Arten, z. B. Abies-Arten (Fig. 604), Pseudotsuga Douglasi usw., welche die Deckschuppe stets und in jedem Alter des Zapfens zwischen den Fruchtschuppen deutlich hervortreten lassen.
Wichtige Gattungen und Arten: Agathis (Dammara) ist im Malayischen Archipel und bis nach Neuseeland hinüber verbreitet. Agathis australis und A. Dammara liefern Kauri-Kopal, jedoch nicht das Dammaraharz. Araucaria brasiliana und A. imbricata sind stattliche Waldbäume Südamerikas. Zur Gattung Sequoia gehören die gewaltigen Baumgestalten der Mammutbäume aus der kalifornischen Sierra Nevada, Sequoia gigantea, deren Stämme über 100 m Höhe und 12 m Durchmesser erreichen, und die schöne, jener an Höhe und Dicke kaum nachstehende S. sempervirens der Küstengebirge.
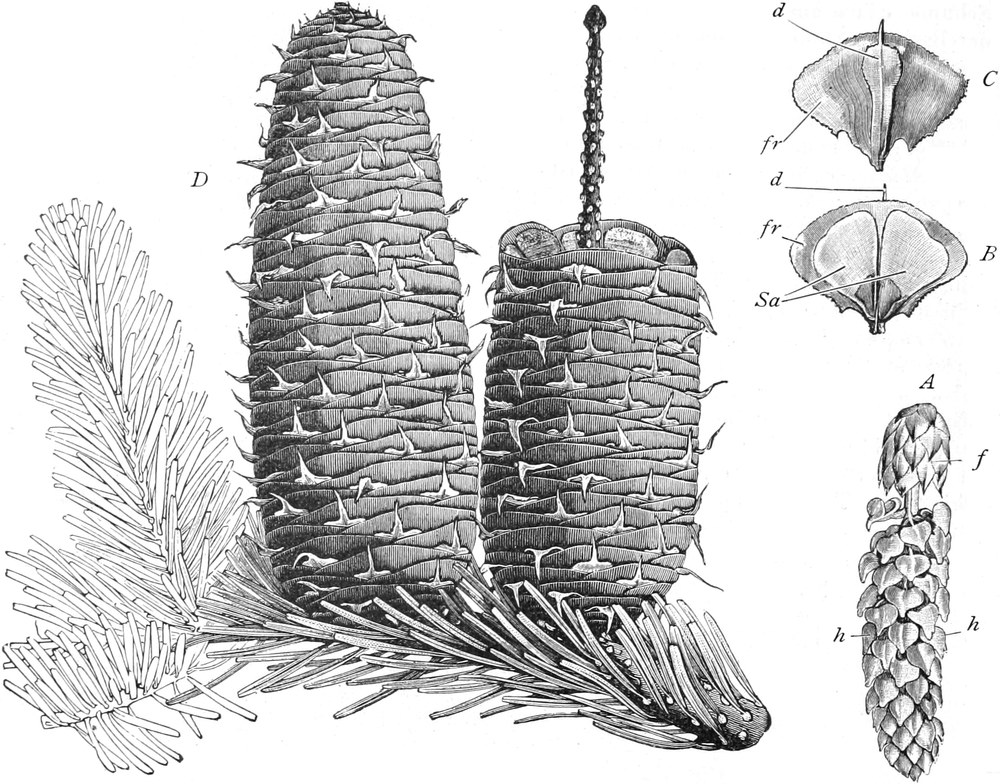
Fig. 604. Abies pectinata. A Männliche Blüte, f Schuppen, h Sporophylle. B Deck- d und Fruchtschuppe fr von oben, C dieselben von unten. Sa Geflügelte Samen. Nach BERG und SCHMIDT. Offizinell. D Abies Nordmanniana mit reifen, zum Teil zerfallenen Zapfen, verkl. aus ENGLER-PRANTL.
Heimische Waldbäume: Die Edeltanne (Fig. 604 A–C), Abies pectinata, ihrer hellen Rinde wegen auch Weißtanne genannt, ist in den mittel- und südeuropäischen Gebirgen zu Hause. Der Baum führt in der vegetativen Region nur Langtriebe. Flache, unterseits mit zwei weißen Streifen versehene Nadeln, deren Spitze ausgerandet ist, stehen mehr oder weniger allseitig an dem Zweige, werden aber an den wagerechten, von oben belichteten Seitenästen durch Drehung ihres Grundes gescheitelt. Sie bleiben 6–8 Jahre erhalten, sollen bisweilen sogar 15 Jahre alt werden. Männliche Blüten entstehen achselständig auf der Unterseite oder den Flanken des Sprosses. Sie wachsen abwärts, so daß ihre der Sporophyll-Unterseite eingesenkten Pollensäcke aufwärts schauen. Durch eine schräge Längsspalte geöffnet, klafft die Wandung weit auseinander, und die Mikrosporen können leicht herausfallen. Weibliche Blüten entspringen oberseits und sind steil aufgerichtet. Die Deckschuppe ist hier etwas länger als die viel breitere Fruchtschuppe. Befruchtete Zapfen behalten ihre aufrechte Stellung; die Schuppen fallen bei der Reife von der Spindel ab, wobei die Samen frei werden. Ihre Ausbildung erfordert ein Jahr. Abies Nordmanniana aus dem Kaukasus (Fig. 604 D), A. concolor, A. balsamea, A. nobilis, alle drei aus Nordamerika, sind in Parkanlagen anzutreffen.
Picea excelsa, die Fichte (oder Rottanne) (Fig. 605), eine stattliche pyramidale Baumgestalt unserer Wälder. Kurztriebe fehlen. Langtriebe allseitig mit vierkantigen spitzen Nadeln besetzt, die 5–7 Jahre, an Haupttrieben bis 12 Jahre alt werden. Männliche Blüten meist an den Flanken vorjähriger Triebe. Sie krümmen sich zur Blütezeit aufwärts. Beide Pollensäcke öffnen sich durch einen Längsriß. Weibliche Zapfen stehen endständig an vorjährigen Trieben desselben Individuums, meist dem Gipfel genähert; sie sind zur Blütezeit gerade aufgerichtet. Die reifen Zapfen hängen und entlassen die Samen zwischen den geöffneten Schuppen hindurch, fallen dann als Ganzes ab; ebenso verhält sich Tsuga canadensis, die „Hemlokstanne“. Die Samenentwicklung ist einjährig. Picea orientalis aus Kleinasien, die serbische Picea omorica und Picea alba aus Nordamerika, ferner Picea engelmannii und Picea pungens; beide als „Blautannen“ bekannt, werden häufig angepflanzt.
Larix europaea, die Lärche (Fig. 607), gehört zu den wenigen laubabwerfenden Koniferen. Sie erneuert ihre zarten, kaum xerophilen Nadeln jährlich. Ihre Triebe sind in Langtriebe und Kurztriebe gegliedert. Erstere, allseitig mit schmalen, linealen Laubblättern bestanden, setzen die Verzweigung des pyramidenförmigen Baumes, dessen Seitenzweige oft tief herabhängen, fort. Kurztriebe entstehen in den Blattachseln an vorjährigen Langtrieben; sie bestehen aus einer Rosette von 30 bis 40 Blättern, denen der Langtriebe ähnlich, nur etwas kürzer. Die Blüten entsprechen in ihrer Stellung einem Kurztriebe. Männliche Blüten sind nach völliger Entwicklung abwärts gekrümmt, sie öffnen ihre aufwärts schauenden Pollensäcke wie bei Abies. Die weiblichen Zapfen stehen aufgerichtet, sie reifen in einem Jahr. Cedrus-Arten, immergrüne Waldbäume des Atlas, Libanon und Himalaya, sind in West- und Süddeutschland in Anlagen anzutreffen.
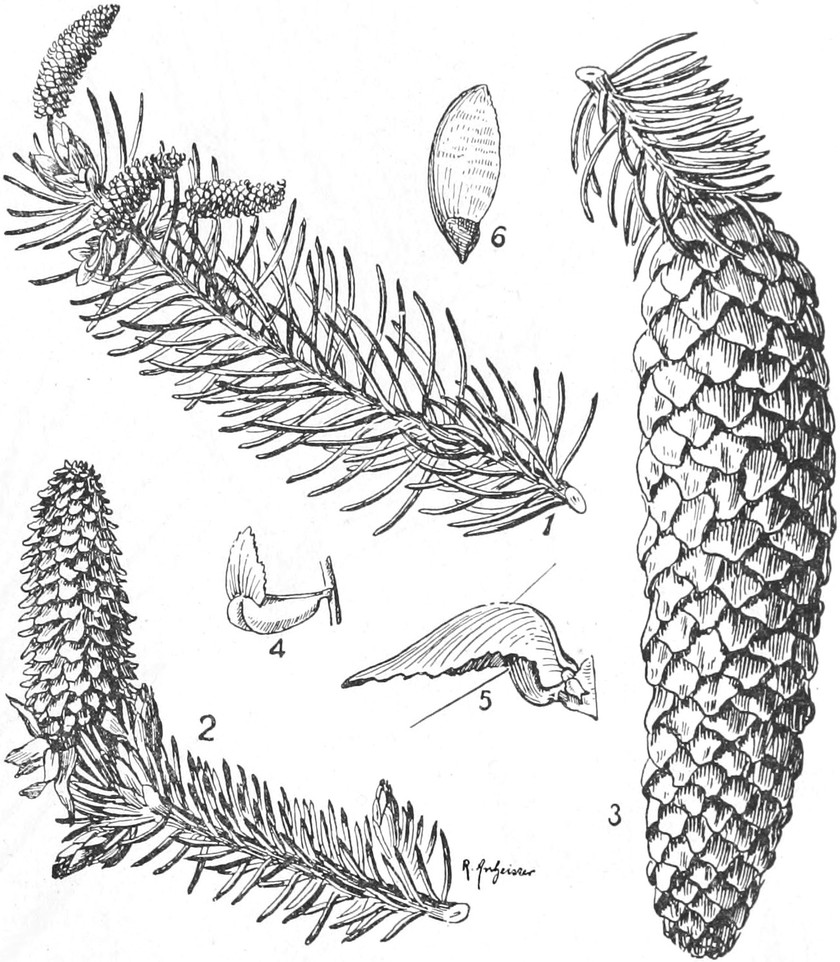
Fig. 605. Picea excelsa. 1⁄2 nat. Gr. 1 Zweig mit männlichen Blüten. 2 Endständige weibliche Blüte. 3 Hängender Fruchtzapfen. 4 Mikrosporophyll. 5 Makrosporophyll, Deckschuppe d von der nach außen umgeschlagenen größeren Fruchtschuppe fr überdeckt, eine Samenanlage am Grunde der letzteren. 6 Reifer Samen mit Flughaut aus einer abgelösten Lamelle der Fruchtschuppe gebildet. 4–6 vergr. — Offizinell.
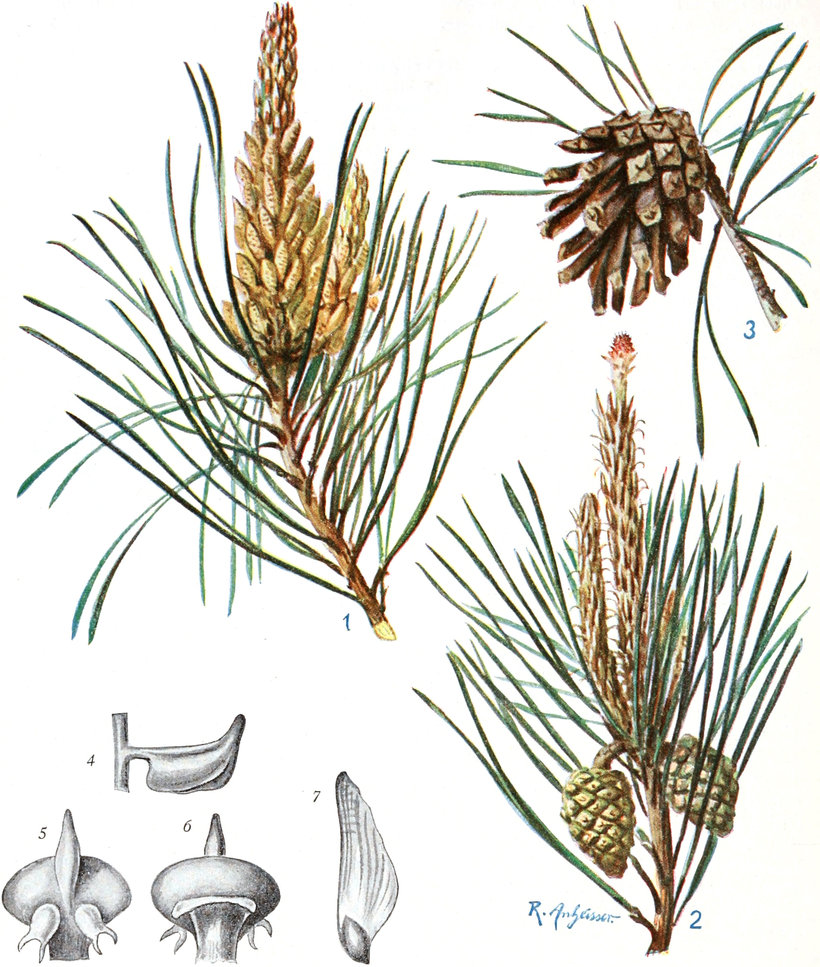
Fig. 606. Pinus silvestris. 2⁄3 nat. Gr. 1 Neuer Jahrestrieb am Gipfel eines mit zahlreichen Kurztrieben besetzten Langtriebes. Am Grunde des jungen Langtriebes viele männliche Blüten je an Stelle eines Kurztriebes; weiter oben bräunliche Schuppenblätter mit je einer Kurztriebanlage in der Achsel. 2 Ebenso, jedoch eine weibliche aufgerichtete Blüte am Gipfel an Stelle eines Langtriebes. Zwei vorjährige, unreife, grüne Zapfen, umgebogen, am Gipfel des vorjährigen Langtriebes. 3 Zapfen des vorvorigen Jahres aufgesprungen, um die reifen Samen zu entlassen. 4 Ein Mikrosporophyll. 5 Makrosporophyll von der Oberseite, zeigt Fruchtschuppe mit zwei Samenanlagen am Grunde. 6 Dasselbe von der Unterseite, die kleine Deckschuppe unter der Fruchtschuppe freigelegt. 7 Reifer Samen mit dem von den Oberflächenschichten der Fruchtschuppe abgespaltenen Flügel. 4–7 vergr. Offizinell.
Die höchste Differenzierung der vegetativen Organe ist in der Gattung Pinus zu finden. Pinus silvestris, unsere gewöhnliche Kiefer (Fig. 606), mag als Beispiel dienen. Junge, 1 bis 2jährige Keimpflanzen führen nach Verlust der zahlreichen Keimblätter (Fig. 592) regelmäßig benadelte Langtriebe. An den älteren Exemplaren geht diese Benadelung völlig verloren und wird durch bräunliche Schuppenblätter ersetzt, in deren Achseln die von häutigen Niederblättern umscheideten zweinadeligen Kurztriebe stehen (vgl. Figurenerkl. 606). Die Nadeln fallen im 3. Jahre ab. Die Samen reifen im 2. Jahre. Sie werden durch Öffnung ihrer bis dahin fest aufeinander gepreßten Fruchtschuppen frei. Der Zapfen fällt dann als Ganzes vom Baume. Pinus montana, Zwergkiefer unserer Gebirge. P. Laricio, die Schwarzkiefer, aus Niederösterreich. P. Pinea, Pinie, und P. Cembra, Arve, beide, wie auch P. Lambertiana, Zuckerkiefer aus Nordamerika mit eßbaren Samen. Arve, Zuckerkiefer und die amerikanische P. Strobus, Weymouthskiefer mit fünfblätterigen Kurztrieben.
Giftig: Juniperus sabina, der Sadebaum und Taxus baccata, die Eibe.
Offizinell: Juniperus communis: Fructus Juniperi (Pharm. germ., austr., helv.). Oleum Juniperi (Pharm. germ., austr., helv.) und Lignum Juniperi (Pharm. austr., helv.), Juniperus oxycedrus: Oleum cadinum (Pharm. helv.). — Juniperus Sabina: Herba Sabinae (Pharm. austr., helv.). — Larix europaea: Terebinthina veneta (Pharm. helv.). — Larix sibirica (Nordrußland, Sibirien): Pix liquida (Pharm. germ.). Verschiedene Pinus-Arten, wie P. silvestris, Laricio, Pinaster, Taeda, australis, cubensis usw., wie auch Abies pectinata und Picea excelsa liefern Terebinthina, Kolophonium, Ol. Terebinthina, Pix liquida (Pharm. germ., austr., helv.); Pinus montana liefert Ol. Pini Pumilionis (Pharm. austr., helv.). — Pinus silvestris: Turio Pini (Pharm. helv.). — Callitris quadrivalvis: Sandaraca (Pharm. austr.).
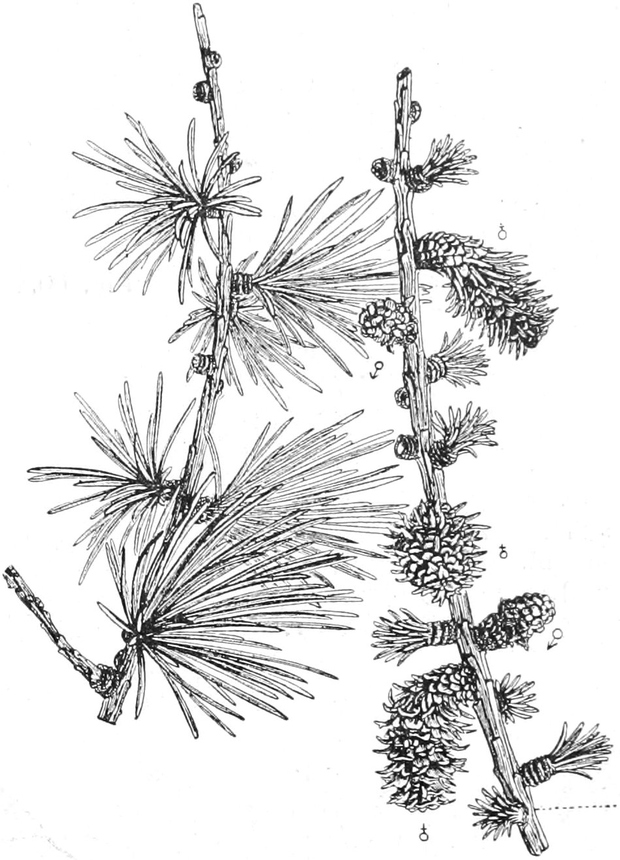
Fig. 607. Larix europaea. Vorjährige Langtriebe, rechts vegetative Kurztriebe tragend, links männliche und weibliche Blüten an ihrer Stelle. Offizinell. Aus ENGLER-PRANTL.
Die einzige Familie der 4. Ordnung, Gnetinae, ist die der Gnetaceae. Nur drei Gattungen gehören ihr an: Ephedra (Fig. 608), blattlose Sträucher wärmerer, trockener Gegenden, vorwiegend der nördlichen Hemisphäre, Welwitschia (Fig. 609) mit der einzigen Art W. mirabilis aus den Wüsten Südwestafrikas, welche außer den hinfälligen Kotyledonen zeitlebens nur ein einziges Paar meterlanger, am Grunde fortwährend nachwachsender Blätter an dem nur gerade über die Erdoberfläche ragenden, keulig angeschwollenen Stammscheitel hervorbringt, und Gnetum (Fig. 611) mit paarig gestellten, breiten, netzadrigen Laubblättern versehene Bäume und Lianen der Tropen. Diese so verschieden aussehenden Gattungen stimmen überein in dem Besitze gegenständiger Blätter (bei Ephedra auf Schuppen beschränkt), in der Entwicklung echter Tracheen im sekundären Holz und Fehlen der Harzgänge, endlich in dem Auftreten einer Hülle in den meist diözisch verteilten Blüten (Fig. 610). Der Besitz dieser Blütenhülle verbietet es, die Gnetaceenzapfen als Blüten anzusprechen; es liegen hier also Infloreszenzen vor, und die Gnetaceenzapfen wären den Koniferenzapfen nicht homolog zu setzen. Wegen naher Beziehungen ihrer Entwicklung sowohl zu den Gymnospermen wie zu den Angiospermen ist die Familie geeignet, den Übergang zu vermitteln. Auch ist bei allen drei Gattungen Insektenbesuch der Blüten beobachtet worden, der zur Zeit freilich nur bei Ephedra campylopoda zur Bestäubung zu führen scheint. Über die Entwicklung der Geschlechtsgeneration vgl. S. 492.
Die fossilen Gymnospermen[473].
Reste von Gymnospermen sind, im Gegensatz zu Pteridophyten, in den ältesten paläozoischen Schichten, dem Kambrium und Silur, bisher nicht gefunden; sie treten zuerst im Devon auf, jedoch nur spurenweise, und erreichen erst in der Steinkohlenflora größere Bedeutung. Von den Cycadofilices, Stämmen mit sekundärem Dickenwachstum und farnähnlicher Belaubung, welche bisher immer den Pteridophyten zugerechnet wurden, trennen OLIVER und SCOTT neuerdings die Pteridospermeae ab, die sie kurz als farnähnliche Samenpflanzen charakterisieren. Diese sind im Anschluß an die Pteridophyten S. 461 behandelt.
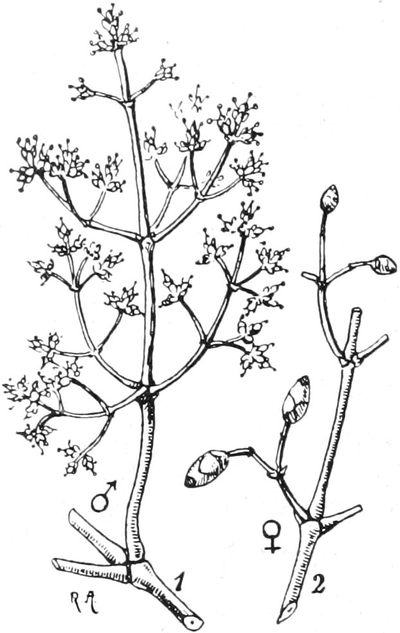
Fig. 608. Ephedra altissima. 1 Habitus eines männlichen Blütenstandes und 2 eines unreifen Fruchtstandes. 2⁄3 nat. Gr.
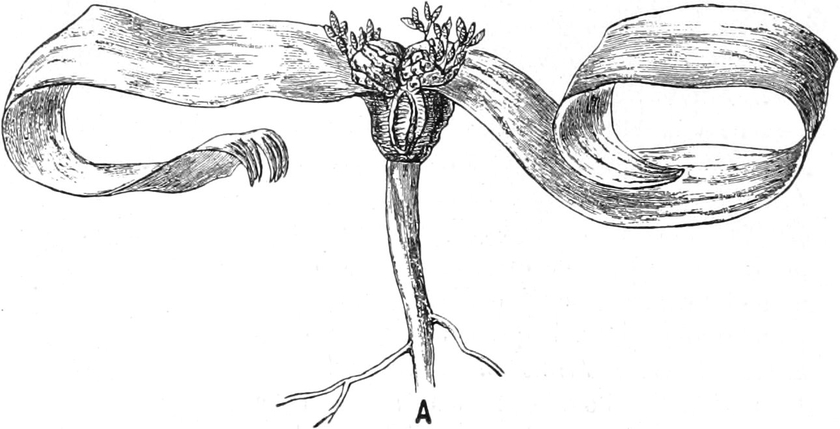
Fig. 609. Welwitschia mirabilis. Jüngere Pflanze nach ENGLER-PRANTL, stark verkleinert.
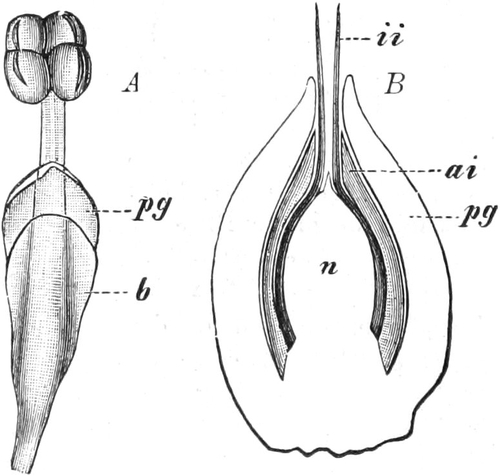
Fig. 610. A Ephedra altissima. Männliche Blüte. Vergr. 16. pg Perigon, b Blatt. Nach E. STRASBURGER. — B Längsschnitt durch eine weibliche Blüte von Gnetum gnemon. Nach J. P. LOTSY. Vergr. 32. n Nucellus, ii inneres, ai äußeres Integument, pg eine weitere integumentartige Hülle, die als Perigon gedeutet worden ist.
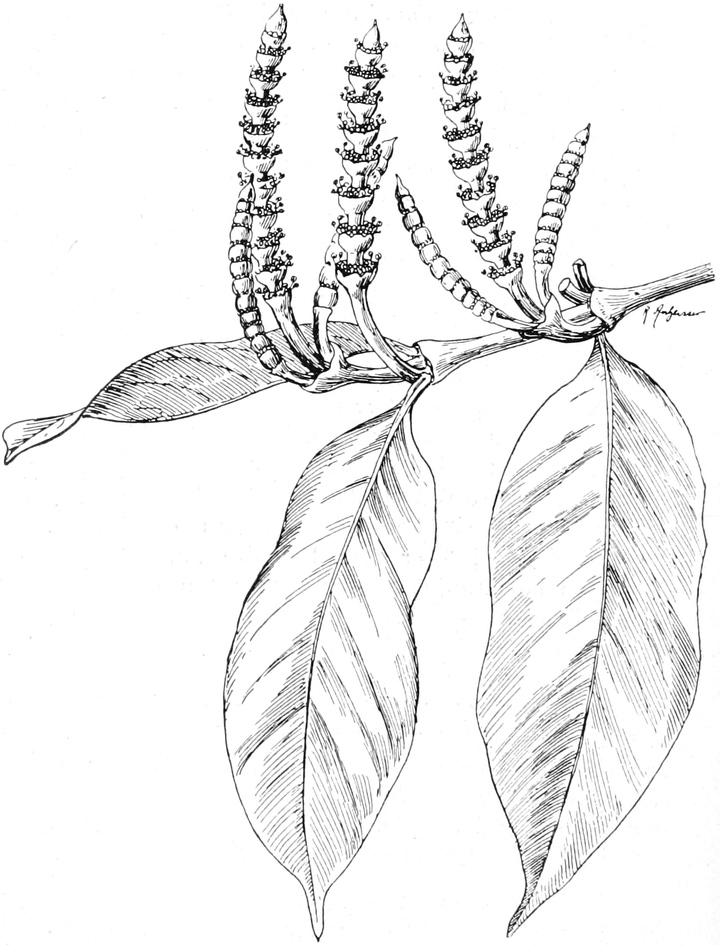
Fig. 611. Gnetum gnemon. Zweig mit männlichen Blütenständen aus zahlreichen akropetal aufsteigenden Wirteln bestehend, deren jeder über den in Spiralen angeordneten männlichen Blüten eine Reihe steriler weiblicher Blüten trägt. 1⁄2 nat. Gr.
Cordaitaceae. Ein auf die paläozoischen Epochen beschränkter, höchst eigenartiger Typus ist Cordaites. Dank der vorzüglichen Erhaltung ist Cordaites morphologisch fast ebenso genau bekannt, wie die jetzt lebenden Gymnospermen. Es waren hohe verzweigte Bäume mit handförmig schmalen oder breiteren, ganzrandigen oder wenig gelappten parallelnervigen Blättern, die am Zweigende schopfig gehäuft stehen, und mit Blüten, die von denen der jetzigen Gymnospermen sehr abweichen. Männliche wie weibliche Blüten sind je in ährenförmigen, achselständigen Blütenständen zu mehreren vereinigt. Die weiblichen Blüten bestehen lediglich aus einer atropen Samenanlage, die das in der Achsel eines Hochblattes befindliche Fruchtblatt aufbraucht. Die Hochblätter gleichen den vegetativen Laubblättern (Fig. 612, 3, 4). Am Scheitel des Nucellus ist eine tiefe Pollenkammer eingesenkt, in der vielfach Pollenkörner angetroffen werden. Die männlichen Blüten schließen kleine Sprosse ab, die von zahlreichen sterilen Hochblättern umhüllt sind und am Vegetationspunkt nacheinander zahlreiche mit 2–4 Antheren gekrönte Staubblätter hervorbringen (Fig. 692, 1, 2). Phylogenetisch wichtig ist der Umstand, daß das männliche Prothallium einen mehrzelligen Gewebekörper darstellt. Die Struktur der Samenanlagen und der Samen zeigt ebenfalls große Ähnlichkeit mit Cycas. Neben wenig zahlreichen Resten (Cycadites, Dicranophyllum), welche man in dieselbe Verwandtschaft rechnen mag, stellt Cordaites im ganzen Karbon den am reichsten entwickelten Gymnospermentypus dar. Erst im unteren Rotliegenden zeigen sich zweifellose Cycadophyten.
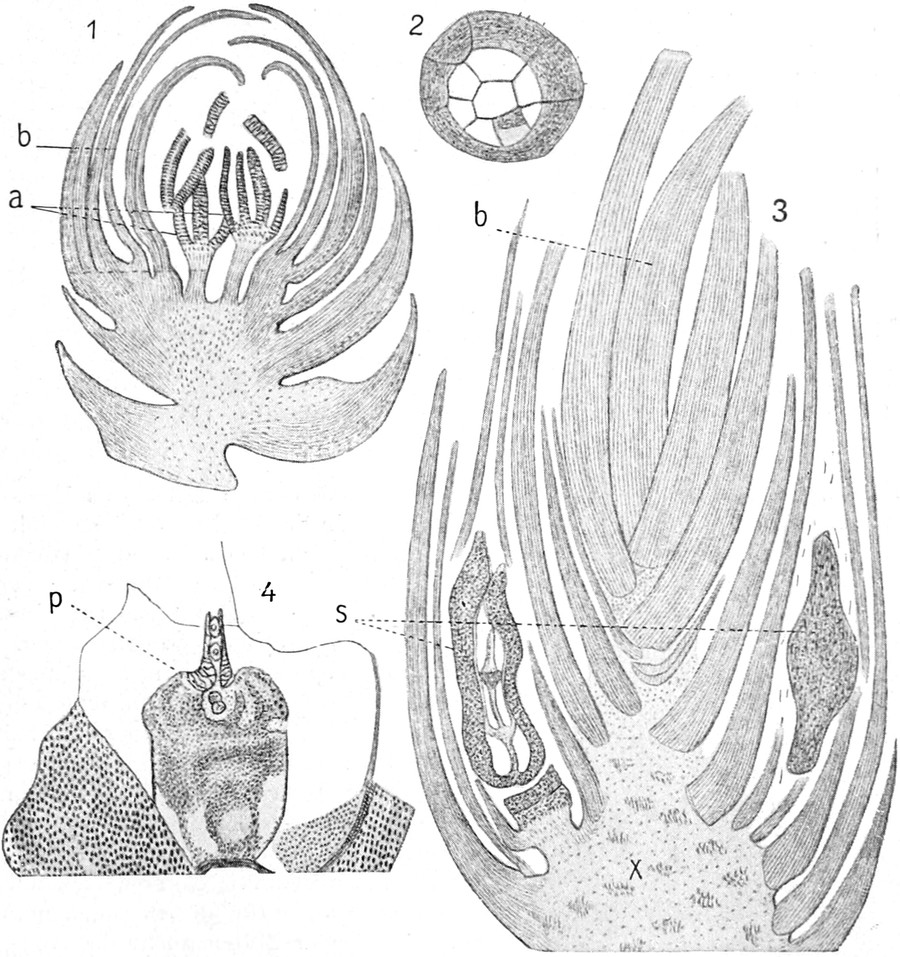
Fig. 612. 1. Cordaites subglomeratus. Längsschliff einer männlichen Blütenknospe. b Hüllblätter. a Staubblätter mit mehreren Antheren. 2. Ein Pollenkorn. Die Prothalliumzelle durch gebogene Wand abgeteilt; der Rest des Kornes in zahlreiche Zellen zerlegt. 3. C. Williamsoni. Längsschliff eines Fruchtsprosses. b Blätter, s Samenlängsschliff. 4. G. Grand’Euryi. Längsschliff durch eine Samenanlage mit tiefer Pollenkammer im Nucellus, die mehrere Pollenkörner enthält. Nach B. RENAULT.
Mit dem Beginn der mesozoischen Schichten schwinden die Cordaiten. Die Gymnospermenflora geht mit Cycadophyten, Ginkgoinen und Koniferen erloschener Typen durch die Trias hindurch und findet im Jura eine mächtige Entwicklung. Die Ginkgoinen und die Cycadophyten erreichen hier ihren Höhepunkt.
Bennettitaceae. Über das Aussehen und die hohe Entwicklungsstufe mesozoischer Cycadophyten berichtet auf Grund reichen, in Nordamerika gefundenen und von WIELAND bearbeiteten Materiales SCOTT. Es handelt sich um Bennettites-Arten, deren aus Europa früher bekannt gewordene Früchte hermaphrodite Blüten bereits hatten vermuten lassen; die von dem amerikanischen Autor angewandte Benennung Cycadeoidea ist also mit Bennettites synonym. Niedrige, zum Teil verzweigte Stämme, im Aussehen und der Beblätterung den lebenden Cycadaceen ähnlich, tragen 12 cm lange hermaphrodite Blüten. Hundert oder mehr spiralig angeordnete Perianthblätter umschließen einen Wirtel von 18–20 Mikrosporophyllen, die am Grunde zu einer tief ausgehöhlten Schüssel verwachsen sind, in deren Mitte sich das Gynäceum erhebt (Fig. 613). Die gefiederten, 10 cm langen Mikrosporophylle erinnern an Farnblätter, ebenso ihre Mikrosporangien an die Sporangien der Marattiaceen. Das Gynäceum besteht aus zahlreichen, langgestielten, atropen Samenanlagen, die von Schuppenblättern umhüllt und durch nach oben stark verdickte Wände voneinander getrennt werden, jedoch die Mikropyle frei nach außen münden lassen. Die reifen Samen enthalten einen hochentwickelten dikotylen Embryo und entbehren des Endosperms; sie werden von den an ihren äußeren Enden sich zusammenfügenden Schuppen wie von einem Fruchtknoten eingeschlossen (Fig. 614). Wie die paläozoischen Pteridospermeen Charaktere der Farne und Gymnospermen in sich vereinigen, so finden sich in den mesozoischen Bennettites- bzw. Cycadeoidea-Blüten solche der Angiospermen mit denen von Gymnospermen und Farnen zugleich verbunden.
Fig. 613. Rekonstruierter Blütenlängsschnitt von Cycadeoidea (Bennettites) ingens nach G. R. WIELAND aus D. H. SCOTT.
Im Jura zeigen sich echte Araucarien, welche zu den älteren Koniferen gehören. Im Wealden herrschen unter den Gymnospermen noch die Cycadophyten und Ginkgoinen mit einigen Koniferen; in der eigentlichen Kreide treten die altertümlichen Typen immer mehr zurück, während die Koniferen immer zahlreicher werden. Unter ihnen zeigen sich bereits jetzt noch lebende Gattungen, wie Dammara, Sequoia, Pinus, Cedrus, Abies, Callitris usw. Auch die Taxaceen scheinen vertreten zu sein, doch ist die Zugehörigkeit der Reste zweifelhaft.
Fig. 614. Längsschliff durch eine Frucht von Bennettites Gibsonianus nach D. H. SCOTT.
Die Gymnospermen des Tertiärs gehören durchaus noch lebenden Typen, zum großen Teil noch lebenden Arten an. Koniferen sind vorherrschend; von Ginkgoinen ist nur Ginkgo biloba vorhanden, und zwar auch in Europa, zusammen mit anderen jetzt auf Ostasien oder Nordamerika beschränkten Arten, wie Cryptomeria japonica, Taxodium distichum, Sequoia gigantea und sempervirens, Pinus strobus usw. Auch eine Angehörige der Cycadaceae (Encephalartos) ist gefunden.
II. Klasse. Angiospermae[474].
Bei den Angiospermen ist die lange strittige Frage, ob die Monokotyledonen oder die Dikotyledonen voranzustellen seien, zur Zeit wohl dahin entschieden, daß man die Monokotyledonen von den Polycarpicae unter den Dikotyledonen ableitet, die in Blütenorganisation, anatomischem Aufbau und verschiedenen morphologischen Merkmalen mit monokotylen Gewächsen übereinstimmen. So wird man jetzt die Dikotylen in der systematischen Reihenfolge voranstellen und die Monokotylen ihnen folgen lassen.
Dafür ist außerdem entscheidend, daß ein Übergang von den Gymnospermen direkt zu den Monokotylen völlig ausgeschlossen erscheint, daß dagegen eine Anknüpfung dikotyler Pflanzen an die Gymnospermen nicht ganz aussichtslos sein dürfte. Wie sich in der Entwicklung der männlichen und weiblichen Organe Parallelen und Weiterbildungen zwischen Gymnospermen und Angiospermen erkennen lassen, ist vorher S. 486 f. dargestellt; doch auch in der Ausgestaltung der ganzen Blüten ergeben sich Ableitungsmöglichkeiten.
Der Versuch WETTSTEINs, die einfachsten Angiospermenblüten, etwa diejenigen der Gattung Casuarina, von den ebenso einfachen Infloreszenzen von Ephedra abzuleiten, leidet daran, daß, wie wohl immer mehr die Überzeugung durchdringt, in den „einfachen“ Angiospermenblüten durchweg reduzierte, nicht aufsteigende Reihen vorliegen. So kann daran nicht mehr angeknüpft werden, trotz mancher verlockend erscheinenden Einzelheiten, wie Insektenbestäubung bei Ephedra.
Fig. 615. Androgyne Infloreszenz von Gnetum hypothetisch auf einen Wirtel beschränkt (vgl. Fig. 611, S. 520). Seitenansicht halb von oben. Sie beginnt mit einem sterilen Brakteenpaar n, zu dem das einzige fertile Paar f dekussiert steht. Gez. von N. PATSCHOVSKY.
Nach Ablehnung dieses Ableitungsversuches wird man sich an die Polycarpicae erinnern müssen, von denen ja zweifelsohne die Reihe der Monokotyledonen abgeleitet werden konnte. Zunächst ist der spiralige Blütenaufbau der typischen Polycarpicae ein starker Hinweis darauf, daß hier die Verbindung zu den spiraligen Zapfenblüten der Koniferen liegen müsse. Die stets monözische Koniferenblüte könnte man sich mit Hilfe der androgynen Blütenstände von Gnetum etwa in die hermaphrodite Anordnung der angiospermen Polycarpicaeblüte übergeführt denken, wie Fig. 615 dies zu veranschaulichen sucht. Sie bietet direkt das Vorbild einer Polycarpicaeblüte mit zahlreichen spiralig stehenden Staubblättern und einigen apokarpen Fruchtblättern, ohne daß daraus auf die phylogenetischen Beziehungen geschlossen werden soll. Eine wesentliche Stütze dieser Anschauung wurde durch blütenbiologische Befunde von DIELS[475] gegeben, der nachweisen konnte, daß ebenso wie gewisse südafrikanische Encephalartos-Arten auch einige zu den Polycarpicae gehörige Pflanzen durch Käfer bestäubt werden. Da nun die Coleopteren die phylogenetisch ältesten blütenbesuchenden Insekten, an der ältesten lebenden Gymnospermenfamilie als Bestäuber auftreten, läßt sich auf ähnliches Alter einiger ebenfalls von Käfern bestäubter Polycarpicae schließen.
1. Unterklasse. Dicotylae.
Die Dikotylen sind bis auf vereinzelte Ausnahmen mit zwei Keimblättern versehen. Die Unterschiede epigäischer und hypogäischer Keimung sind S. 507 f. besprochen.
Der Stamm besitzt in der Regel kreisförmig angeordnete offene Leitbündel (vgl. S. 123 u. Fig. 165), die Wurzel abwechselnd gelagerte Gefäß- und Siebteile auf dem Querschnitte. Das in den Leitbündeln des Stammes und auf der Innenseite der Siebteile der Wurzel enthaltene Meristem wird bald zu einem geschlossenen Ringe ergänzt, der als Kambium ein regelrechtes Dickenwachstum der Stämme und Wurzeln vermittelt.
Das typische Dikotylenblatt ist mit mehr oder minder langem Stiel versehen, es besitzt häufig Nebenblätter als Auszweigungen des Blattgrundes, entbehrt aber meist einer Scheide (Ausnahme Umbelliferen). Seine Spreite ist einfach oder zusammengesetzt; ihre Gliederung kommt nur durch seitliche Verzweigung der Blattanlage zustande. Der Blattrand ist von sehr verschiedenartiger Form, die Nervatur in der Regel netzartig (Fig. 128, S. 95).
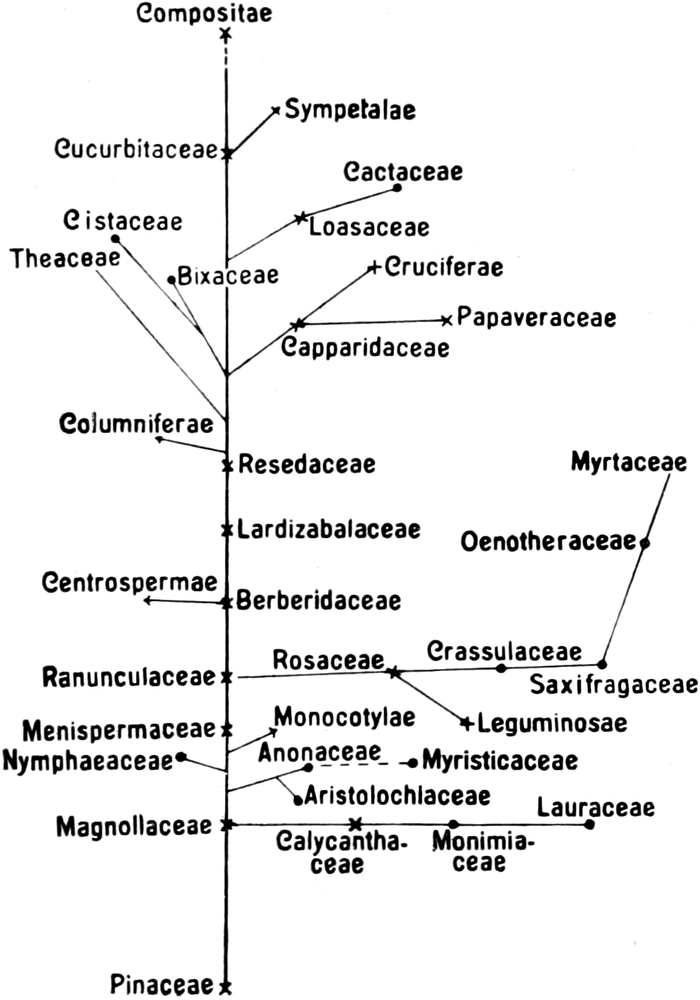
Stammbaum der Dikotylen, besonders der Polycarpicae und Verwandten, nach serodiagnostischen Untersuchungen von CARL MEZ (modifiziert).
Die Dikotylenblüten sind in den typischen Fällen fünfzählig und fünfwirtelig, doch finden sich abweichende Formen in großer Menge. Sie entsprechen in regelmäßig gebauten Vertretern der Formel K 5 C 5 A5 + 5 G 5.
Neben diesen morphologischen und biologischen Gesichtspunkten erfordert aber auch die von der Königsberger Schule durchgeführte serodiagnostische Methode[476] eine Berücksichtigung, die von sich behauptet, daß sie sich „nicht auf unsichere und den Einflüssen der Außenwelt direkt ausgesetzte, deshalb eventuell konvergent ausgebildete Eigenschaften der Lebewesen bezieht, sondern auf wirkliche Verwandtschaftsverhältnisse, nämlich auf die chemischen Verwandtschaften der Eiweißstoffe“. Diese Methode beruht auf den Erfahrungen der Immunitätslehre. Wenn im tierischen Blut, oder besser Serum, durch gewisse eingeführte giftige Eiweißstoffe automatisch antitoxisch wirkende Eiweißverbindungen oder Antigene gebildet werden und diese Antigene innerhalb größerer Verwandtschaftsreihen bei gleichem Eingriff die gleichen sind, so wird man auch umgekehrt aus einer Antigengleichheit auf eine Verwandtschaft der betreffenden eingeführten Eiweißkörper zurückschließen dürfen. Und wenn es auf diese Weise gelungen ist, die Eiweißstoffe verschiedener Vogeleier voneinander zu unterscheiden und die Blutsverwandtschaft der Menschen mit den Menschenaffen serodiagnostisch festgestellt werden konnte, so müßte es auch möglich sein, auf gleichem Wege (durch Tierversuche) die Beziehungen verschiedener Pflanzeneiweiße zu bestimmen. Wenn dann die Vorsicht beobachtet wird, daß stets erst beim Gelingen auch des reziproken Versuches das Resultat als gültig angenommen wird, so ist damit ein gewisser Grad von Sicherheit erreicht; d. h. also, wenn etwa die Antigene von Pinus und den Magnoliaceen eine Eiweißgleichheit ergeben, so muß verlangt werden, daß ebenso das Magnoliaceen-Serum die Abietineen oder Pinusarten als verwandte Gruppen anzeigt. Wegen aller Einzelheiten muß auf die einschlägige Literatur verwiesen werden. Wenn wir also den Versuch machen, die Ergebnisse dieser serodiagnostischen Untersuchungen in der Form von Stammbäumen dem System unterzulegen, so wird das um so unbedenklicher dort geschehen können, wo die Morphologie schon vorher dieselbe Richtung eingeschlagen hatte, während dort, wo das nicht der Fall ist, die nötige Reserve beobachtet werden muß. Da der Plan dieses Buches eine Berücksichtigung nur der offizinell und wissenschaftlich wichtigen Familien vorsieht, so sollen die vollständig mitgeteilten serodiagnostischen Stammbäume nur dazu dienen, das vorliegende Material gleichsam als Gerippe zu geben, das der fraglichen Familie ihren Standplatz anweist.
A. Choripetalae (getrennt blättrige Blumenkrone).
1. Ordnung. Polycarpicae.
Hermaphrodite, meist lebhaft gefärbte Blüten. Eine starke Verlängerung der Blütenachse mit spiralig daran aufgereihten freien einzelnen Blütenteilen des Perianths, der Staubblätter und der apokarpen Fruchtblätter, deren Zahl unbestimmt und sehr erheblich sein kann, zeichnet die typischen Vertreter der Polycarpicae aus. Die Sonderung von Kelch und Krone ist vielfach nicht durchgeführt, und in einzelnen Fällen, wie bei Calycanthus, schließen sogar die Laubblätter mit spiraliger Stellung direkt an die Blütenhochblätter an. Die Form der Staubblätter ist häufig blattartig mit einem die Antheren überragenden Konnektiv oder blattartiger Verbreiterung des Filaments oberhalb der Anthere. Die Narben bilden das Ende der Fruchtblätter ohne stielartigen Griffel, Insektenbestäubung (und zwar in einigen primitiveren Formen durch Käfer) ist allgemein verbreitet. Auch der Aufbau des Holzkörpers ist primitiv und kommt in einzelnen Fällen dem Koniferenholze nahe.
Zu dieser Ordnung zeigen die einfachsten Formen der Monokotyledonen, die Helobiae, unverkennbare Verwandtschaft, da sie mit ihnen in der Vermehrung der Staubblätter und der apokarpen Fruchtblätter gut übereinstimmen. Außerdem lassen sich zahlreiche Familien unter die Polycarpicae einreihen, welche in vielen der oben als typisch angeführten Eigenschaften abweichen können, in anderen aber sich trotzdem als Angehörige der Reihe erkennen lassen. Hier muß es genügen, die wichtigsten anzuführen:
1. Familie Magnoliaceae. Die Magnoliaceae sind durchweg Holzgewächse mit großen endständigen Blüten, deren Perianth, ohne Scheidung in Kelch- und Kronblätter, ebenso wie die zahlreichen Staubblätter und apokarpen Fruchtblätter an einer langen Blütenachse spiralig aufsteigen. Die Narbe ist direkt den Fruchtblättern ohne Griffel aufgesetzt. Ölzellen in Stamm und Blättern, Pollenkörner mit einer Austrittstelle charakterisieren die Familie innerhalb der Reihe. Drimys und Zygogynum besitzen koniferenartiges tracheenloses Holz. Magnolia und der Tulpenbaum, Liriodendron sind vielfach angepflanzt. Offizinell: Fructus Anisi stellati (Pharm. austr., helv.) von Illicium anisatum, Früchte von Illicium religiosum sind giftig. 2. Anonaceae. Durch spiralige Anordnung der Staubblätter und apokarpe Fruchtblätter hierher gehörige tropische Holzgewächse, deren Samen durchweg ruminiertes Nährgewebe besitzen. Darin gleicht ihnen die 3. Familie der Myristicaceae, deren diözisch verteilte Blüten wesentlich einfacher gebaut sind. Offizinell: Semen Myristicae, Oleum Nucistae, Oleum Macidis (Pharm. germ., austr., helv.) und Macis (Pharm. austr.), alles abstammend von dem Samenkerne von Myristica fragrans (Fig. 616, 617). 4. Calycanthaceae zeigen direkten Anschluß der Laubblätter an die durchaus spiralig gebaute Blüte mit zahlreichen freien Perianth-, Staub- und Fruchtblättern im vertieften Blütenboden. Hier und bei Familie 10 ist die Abzweigung der Rosaceae zu vermuten.
Weitere Familien der Polycarpicae zeigen eine Beschränkung auf dreizählige einfach oder doppelt vorhandene Perianth- und Staubblattkreise, wobei die 5. Familie der Berberidaceae nur ein Fruchtblatt besitzt, während die 6. der Menispermaceae deren drei führt. An die Berberidaceen soll nach den Resultaten der serodiagnostischen Untersuchungen der Centrospermenast Anschluß finden.
Die dornblättrige Berberis vulgaris ist der einheimische Vertreter der weit verbreiteten Gattung. Offizinell ist Podophyllinum (Pharm. germ., helv.) von der nordamerikanischen Berberideenstaude Podophyllum peltatum (Fig. 618) und Radix Colombo (Pharm. germ., austr., helv.) von der schlingenden Menispermacee Jatrorrhiza palmata.
Ebenfalls aus dreizähligen Doppelkreisen der Perianth- und Staubblätter besteht die Blüte der 7. Familie der Lauraceae, deren einzelnes einsamiges Fruchtblatt der dreizähligen Narbe nach als ein aus drei Blättern verwachsener Fruchtknoten gedeutet wird. Die Frucht wird beerenförmig oder zur Steinfrucht. Die Lauraceen sind aromatische immergrüne Bäume oder Sträucher mit lederigen, ganzrandigen Blättern, die nur bei dem nordamerikanischen blattwechselnden Sassafras bisweilen dreizählig sind (Fig. 619). Charakteristisch sind klappig sich öffnende Antheren.
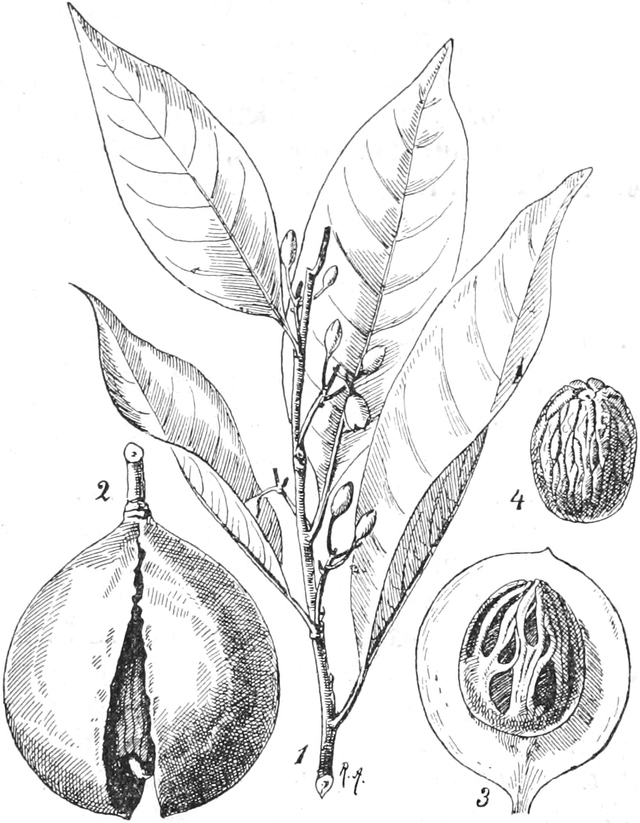
Fig. 616. Myristica fragrans. 1 Blühender männlicher Zweig. 1⁄2 nat. Gr. 2 Reife Frucht hängend, aufgesprungen. 3 Dieselbe Frucht nach Entfernung der halben Fruchtschale, zeigt den dunkelbraunen Samen vom durchbrochenen Arillus (Macis) umhüllt. 4 Samenkern (Droge) von der Samenschale befreit. — Offizinell.
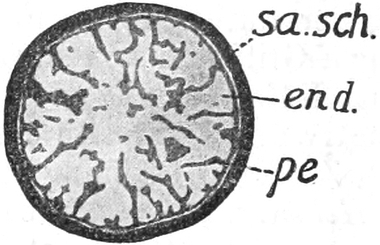
Fig. 617. Myristica. Samenquerschnitt. sa sch Samenschale. end Endosperm. pe Perisperm. — Offizinell.
Laurus nobilis, der Lorbeer, diözischer immergrüner Baum der Mittelmeerländer (Fig. 621, 622), wird bei uns vielfach als Kalthauspflanze kultiviert. Größere Pflanzungen zur Ölgewinnung finden sich schon am Gardasee, wo der Baum vom Oktober ab seine länglich-ovalen, schwarzblauen Steinfrüchte reift. Cinnamomum umfaßt eine Anzahl wichtiger Nutzbäume, so den japanisch-chinesischen Kampferbaum, den chinesischen und den Ceylon-Zimtbaum, stattliche immergrüne Bäume, mit lederig-glänzenden Blättern, aber unansehnlichen grünlichen Blüten in blattachselständigen Infloreszenzen. Persea gratissima (Fig. 620), Baum des tropischen Mexiko, liefert als Frucht die wohlschmeckende Aguacate oder Avocadobirne. Arten von Cassytha, einzige Gattung mit krautigen Vertretern sind überall in den Tropen häufige, Cuscuta-ähnliche Parasiten.
Offizinell: Fructus Lauri (Pharm. germ., austr.) und Oleum Lauri (Pharm. germ., austr., helv.) von L. nobilis. Camphora. Kampfer (Pharm. germ., austr., helv.), von Cinnamomum Camphora; Cortex Cinnamomi und Oleum Cinnamomi Ceylon-Zimt (Pharm. germ., austr., helv.) von C. Cassia und C. Zeylanicum. Lignum Sassafras (Pharm. germ., austr.), Cort. Sassafras (Pharm. helv.) von Sassafras officinale.
Fig. 618. Podophyllum peltatum. 1⁄2 nat. Gr. Aus Natürl. Pflanzenfamilien. — Offizinell.
Fig. 619. Sassafras officinale. Nach BERG und SCHMIDT. 1⁄2 nat. Gr. 1 Männliche Infloreszenzen am noch unbelaubten Zweig. 2 Früchte am beblätterten Zweig. 3 Männliche Blüte. 4 Weibliche Blüte. 5, 6 Geschlossene Staubblätter der beiden äußeren Kreise. 7 Geöffnetes Staubblatt des inneren Wirtels. 8 Fruchtknoten mit Griffel und Samenanlage. — Offizinell.
Fig. 620. Blütendiagramm von Persea. Nach A. W. EICHLER.
8. Familie Aristolochiaceae. Die zygomorphen Blüten (Fig. 546) haben ein einfaches verwachsenes Perianth und ein zum Gynostemium vereinigtes Andröceum und Gynäceum.
Die parasitischen Rafflesiaceae und die insektivoren Familien der Cephalotaceae, Sarraceniaceae, Nepenthaceae und auch der Droseraceae schließen sich am besten an die Polycarpicae an.
Fig. 621. Laurus nobilis mit männlichen Blüten. 1⁄2 nat. Gr. — Offizinell.
Fig. 622. Laurus nobilis mit Früchten. 1⁄2 nat. Gr. — Offizinell.
Die 9. Familie der Nymphaeaceae enthält durchweg Wasserpflanzen mit untergetauchten oder schwimmenden Blättern von oft riesiger Größe. Die vegetativen Organe führen Milchsaft (Fig. 623, 625). In der Nähe der Nymphaeaceen ist der Anschluß der Monokotyledonen zu suchen.
Nymphaea alba, unsere heimische Seerose (Fig. 623, 624), breitet zwischen ihren großen schwimmenden Blättern die weißen, von vier starken grünen Kelchblättern geschützten Blüten aus, deren vielzähliges weißes Perianth und leuchtend gelbe Staubblätter spiralig an dem unterständigen, aus zahlreichen Fruchtblättern verwachsenen Fruchtknoten angeordnet sind. Bei Nuphar mit oberständigem Fruchtknoten und unscheinbaren, Nektarien tragenden Kronblättern dient der Kelch als Schauapparat.
Freie apokarpe Fruchtblätter besitzen dagegen die amerikanische Gattung Cabomba (Fig. 625), durch untergetauchte, vielfach zerteilte Blätter neben den ganzrandigen Schwimmblättern ausgezeichnet, und Nelumbium, dessen schildförmiges Laub sich gleich den Blüten über das Wasser erhebt. Die käferblütige Victoria regia und die autogame Euryale ferox sind ihrer Riesenschwimmblätter wegen bekannt und werden in unseren Warmhäusern viel kultiviert; diese ist in den asiatischen Tropen, jene im Amazonas heimisch.
Fig. 623. Nymphaea alba. 1⁄2 nat. Gr. Der entblätterte Fruchtknoten zeigt die spiralige Stellung der Staubblätter und Kronblätter.
Fig. 624. Nymphaea. Diagramm. Nach F. NOLL.
Fig. 625. A Diagramm. B Frucht von Cabomba aquatica. Nach H. BAILLON. Vergr. 4.
Fig. 626. Blütendiagramme von Ranunculaceen. A Adonis autumnalis. B Aconitum Napellus. C Aquilegia vulgaris. D Cimicifuga racemosa. Nach A. W. EICHLER.
10. Familie Ranunculaceae. Die Angehörigen der Ranunculaceen sind einjährige Kräuter (Myosurus), häufiger Stauden (Caltha) oder ganz selten Holzgewächse (Paeonia-Arten), mit wechselständigen, nebenblattlosen Blättern. Die spiralige Anordnung der Teile ihrer Zwitterblüten tritt an der langen Blütenachse von Myosurus, Mäuseschwänzchen, am deutlichsten in Erscheinung, ist aber fast überall da zu beobachten, wo Staub- oder Fruchtblätter in großer Zahl auftreten (Fig. 626, 627). Das Perianth ist einfach oder doppelt, perigonartig (Aconitum) oder in Kelch und Krone gesondert (Ranunculus); das vielgliedrige Andröceum birgt Pollenkörner mit mindestens drei Austrittstellen. Die Fruchtblätter sind oberständig, frei; sie stehen auf der gewölbten Blütenachse (Fig. 627) zu drei bis vielen beisammen, enden in eine griffellose Narbe und tragen die Samenanlagen an der Bauchnaht (Fig. 626 D) einzeln oder in Mehrzahl. Früchtchen der Sammelfrucht sind Balgfrüchte (Paeonia), Nüßchen (Anemone) oder Beeren (Hydrastis), deren Samen den kleinen Embryo in großem, ölhaltigem Endosperm führen (Fig. 628). An die Ranunculaceen schließen sich nach den serodiagnostischen Untersuchungen die ihnen auch morphologisch nahestehenden Rosifloren an.
Fig. 627. a Blüte von Ranunculus sceleratus. b im Längsschnitt, vergr. Nach H. BAILLON.
Fig. 628. Ranunculus arvensis. Nach H. BAILLON. Fruchtblatt im Längsschnitt, vergr.
Fig. 629. Ranunculus sceleratus. 1⁄2 nat. Gr. — Giftig.
Die Ranunculaceen liefern zahlreiche unserer häufigsten Wald- und Wiesenpflanzen. Sie sind alle in mehr oder minder hohem Grade giftig. Die Gattung Ranunculus, an ihren meist gelben glänzenden Blüten und hochgewölbten Blütenachsen mit zahlreichen Nüßchen kenntlich, ist in vielen Arten bei uns verbreitet. Ihre Kronblätter sind mit einem Honiggrübchen am Grunde versehen. R. sceleratus ist eine gefährliche Giftpflanze (Fig. 629, 627), R. arvensis durch die Größe der stacheligen Nüßchen auffallend (Fig. 628). Im Wasser lebende R.-Arten (Batrachium) sind vielfach heterophyll (Fig. 139); die Schwimmblätter dienen, wie bei Cabomba, den sich über den Wasserspiegel erhebenden Blüten als Stütze.
Fig. 630. Anemone pulsatilla. 1⁄2 nat. Gr. — Giftig.
In allen Laubwäldern bildet Anemone nemorosa mit den ersten Schmuck des Waldbodens im Frühjahr. Die Pflanze besitzt ein flach im Boden kriechendes Rhizom, das mit einer terminalen Blüte abschließt und durch einen Seitensproß fortgesetzt wird. Das Perianth der Blüte ist einfach, kronartig gefärbt; doch kommt allen Anemonen ein mehr oder minder tief darunter sitzender, meist dreiblättriger Wirtel von grünen Hüllblättern zu, der bei A. Hepatica, der Leberblume, unmittelbar an das Perianth heranrückt und dadurch einem Kelche ähnlich sieht. Alle Arten sind etwas giftig, besonders A. Pulsatilla (Fig. 630), die Küchenschelle. Die Gattung Clematis enthält meist Sträucher und stellt in Cl. Vitalba eine der wenigen einheimischen Lianen; sie liefert zahlreiche Zierpflanzen und weicht durch gegenständige Blätter von allen übrigen R. ab. Clematis-Arten und viele Anemonen versehen ihre kleinen Nüßchen mit Haar- oder Federanhängen, welche der Verbreitung durch den Wind dienen. Caltha palustris (Fig. 631), ein als Butter- oder Dotterblume bekannter Frühjahrsblüher, hat einfaches, intensiv gelbes Perianth und glänzende herz- oder nierenförmige, kurzgestielte Blätter. Die Früchte entwickeln sich, ebenso wie bei den im Winter blühenden giftigen Helleborus-Arten, zu Balgfrüchtchen. Der Eisenhut, Aconitum Napellus (Fig. 632, 633), eine stattliche, mit jährlich sich erneuernden Knollen ausdauernde, stark giftige Staude, ist besonders auf Gebirgswiesen häufig. Seine Blätter sind handförmig geteilt, die einzelnen Zipfel tief fiederspaltig eingeschnitten, der Blütenstand dicht traubig mit dorsiventralen Blüten. Eines der fünf dunkelblauen Kelchblätter ist helmförmig emporgewölbt, es birgt zwei langgestielte, röhrig-zweilappige Nektarien, die, wie bei Helleborus und Eranthis, Kronblättern entsprechen. Die übrigen Kronblätter fehlen oder sind zu unscheinbaren Fädchen verkümmert. Aconitum Lycoctonum besitzt kleinere gelbe Blüten desselben Baues. Aquilegia, Delphinium und Paeonia (Fig. 513) liefern beliebte Zierpflanzen mit lebhaft gefärbten, zum Teil eigenartig geformten Blüten. Actaea und Hydrastis haben Beerenfrüchte.
Offizinell: Tubera Aconiti von Aconitum Napellus (Pharm. germ., helv.). Folia Aconiti von derselben Pflanze (Pharm. helv.). Rhizoma Hydrastis (Pharm. germ., austr., helv.) von der nordamerikanischen Staude Hydrastis canadensis (Fig. 634), die jedes Jahr ihre mit scharf gekielten, zweizeilig stehenden Niederblättern beginnenden Zweige über die Erde emporsendet und einzelne gipfelständige Blüten auf den zweiblättrigen Sprossen bringt. Das einfache weiße Perianth fällt nach Öffnung ab, wie das auch bei Thalictrum-Arten geschieht. Sammelfrucht aus zahlreichen kleinen Beeren mit je 1–2 Samen. Aus dem Rhizom wird Hydrastin dargestellt. Herba Adonidis von Adonis vernalis (Pharm. austr.).
Fig. 631. Caltha palustris. 2⁄3 nat. Gr. — Giftig.
Die 2. Ordnung umfaßt die beiden Familien der Hamamelidinae, Fam. Hamamelidaceae und Platanaceae. Beide Familien enthalten Holzpflanzen mit unansehnlichen anemophilen Blüten und einfachem Perianth, seltener entomophile Blüten mit gefärbtem, eventuell doppeltem Perianth. Zwei Fruchtblätter. Offizinell: Styrax liquidus (Pharm. germ., austr., helv.) von Liquidambar orientalis. Folia Hamamelidis von Hamamelis virginiana (Pharm. austr.). Platanen sind beliebte Alleebäume.
Beide Familien sollen nach den Ergebnissen der serodiagnostischen Untersuchungen nähere Beziehungen zu den verschiedenen Familien der Rosifloren besitzen.
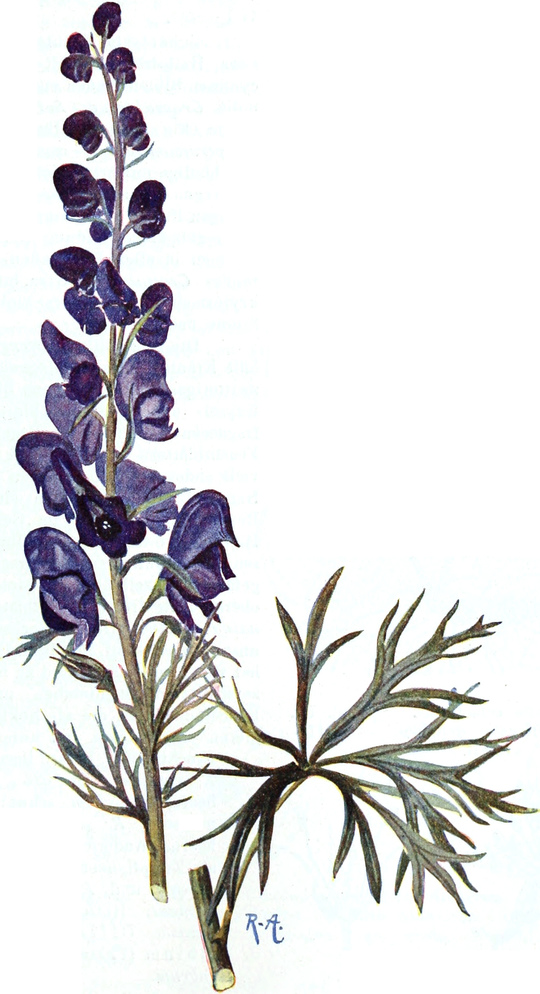
Fig. 632. Aconitum Napellus. 1⁄2 nat. Gr. — Offizinell und giftig.
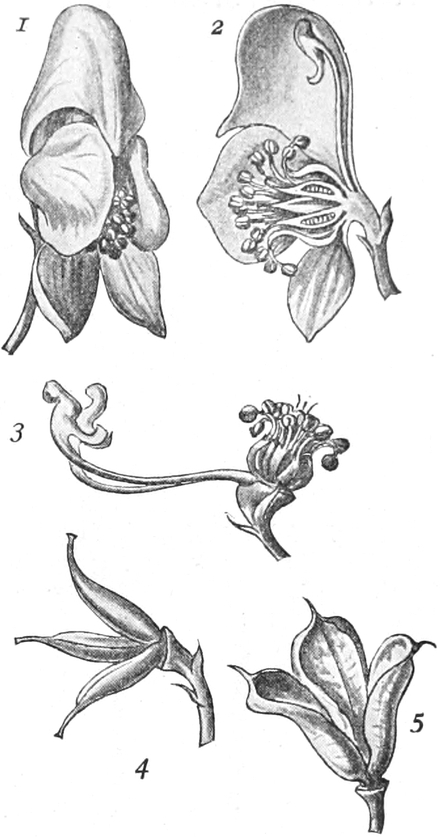
Fig. 633. Aconitum Napellus, nat. Gr. 1 Einzelblüte schräg von vorn. 2 Einzelblüte längsdurchschnitten. 3 Die zu Nektarien umgebildeten Kronblätter und das Andröceum nach Entfernung des Perigons. 4 Frucht aus drei apokarpen Fruchtblättern. 5 Frucht, aufgesprungen.
3. Ordnung. Rosiflorae.
Die wirtelig gebauten Blüten sind im übrigen denen der Polycarpicae ähnlich: besonders eng ist der Anschluß der Rosaceen an die Calycanthaceen und Ranunculaceen. Einzahl der Fruchtblätter bei den Pruneen und dorsiventrale Blüten der Chrysobalaneen leiten zu den Leguminosen über.
Die Ordnung umfaßt Pflanzen mit wechselständigen Blättern von sehr verschiedener Form und Ausbildung. Ihre fast immer strahligen Blüten sind wirtelig angeordnet, haben 5, 10 oder viele Staubblätter und Fruchtblätter, die Neigung zu apokarper Fruchtbildung zeigen. Charakteristisch ist die starke Beteiligung der Blütenachse an der Blüten- und Fruchtbildung. K5, C5, A5-∞ G1-∞.
Sukkulente Kräuter (vgl. S. 149) oder Halbsträucher mit vielgliedrigen cymösen Blütenständen enthält die 1. Familie Crassulaceae. Sedum, die Fetthenne (Fig. 635), mit fünfzähligen und Sempervivum mit 6-∞zähligen Blüten sind häufige und artenreiche einheimische Gattungen. Bryophyllum-Arten mit vierzähligen Blüten sind ausgezeichnet durch die regelmäßige Bildung von Adventivknospen in allen Kerbstellen des Blattrandes. Crassula, Südafrika, bildet Mimikryformen[477], die in ihrer klobigen Form Steine nachahmen.
Die 2. Familie Saxifragaceae enthält Kräuter neben Holzgewächsen mit zwitterigen obdiplostemonen Blüten. Die Kapsel- oder Beerenfrüchte der Saxifragaceen werden in der Regel aus zwei Fruchtblättern gebildet und enthalten viele endospermhaltige Samen. Die Saxifraga- (Steinbrech-)Arten sind kleine Rosettenpflanzen, die im Gebirge ihre Hauptverbreitung finden. Ihre oft ansehnlichen Infloreszenzen tragen lebhaft gefärbte Einzelblüten mit stets zwei, im oberen Teile freien Fruchtblättern. Parnassia palustris tritt im Hochsommer auf unsern Wiesen auf, ihre fünfzählige Blüte hat vier Fruchtblätter und zu handförmig zerschlitzten Staminodien umgebildete Kronstaubblätter, die als Nektarien fungieren. Ribes-Arten, mit unterständigem Fruchtknoten, liefern Beerenfrüchte. R. rubrum (Fig. 636), Johannisbeere, R. nigrum, schwarze Johannisbeere, R. grossularia, Stachelbeere. Andere Saxifragaceen sind als Zierpflanzen beliebt, wie Ribes aureum und R. sanguineum, Hydrangea, Hortensie, Philadelphus, Deutzia. Offizinell: Syrupus ribium (Pharm. austr.) von Ribes rubrum.
Fig. 634. Hydrastis canadensis. 1⁄2 nat. Gr. Apokarpe Sammelfrucht daneben. — Offizinell.
Fig. 635. Sedum Telephium. Vergr. 4. a Blüte, b Blüte im Längsschnitt. Gez. H. SCHENCK.
3. Familie Rosaceae[478]. Die charakteristischen Merkmale der Rosaceen sind der stete Besitz von Nebenblättern; ferner die Endospermlosigkeit der meisten Rosaceen-Samen, endlich die apokarpen Früchte und meist auch die Vielzähligkeit des Andröceums (Fig. 637). Letztere beiden Eigenschaften kommen auch den Polycarpicae zu und sprechen für engere verwandtschaftliche Beziehungen, doch sind die Blütenglieder bei den Rosaceen streng wirtelig und perigyn gestellt.
In vielen Fällen geht die Vermehrung der Andröceum- und Gynäceumglieder von einer an der schüsseligen Vertiefung der Achse interkalar gelegenen, gürtelförmigen Vegetationszone aus längere Zeit nebeneinander her. Über die Einschiebung neuer Glieder entscheiden räumliche Verhältnisse, so daß bei verschiedenen Individuen derselben Art Differenzen in den Zahlen vorkommen.
Zahlreiche Arten der Gattung Spiraea mit typisch fünfzähligen Blüten und oberständigen Fruchtknoten finden als Ziersträucher Verwendung (Fig. 637 E). Quillaja Saponaria (Fig. 638), der Seifenrindenbaum Chiles, ist ein immergrüner Baum mit kurzgestielten, wechselständigen, lederartigen Blättern und gipfelständigen, meist dreiblütigen Dichasien. Die Blüten sind denen von Spiraea ähnlich, aber durch ihre fünfzackige, auf die großen Kelchblätter hinaustretende, honigabsondernde Scheibe charakterisiert, an deren eingekerbten Vorsprüngen die fünf Kelchstaubblätter stehen, während sich die Kronstaubblätter am inneren Rande befinden. Die schmalen Kronblätter sind weiß. Nur die Mittelblüte des Dichasiums ist zwittrig und fruchtbar, die seitlichen mit verkümmertem Fruchtknoten sind männlich. Der oberständige Fruchtknoten liefert eine sternförmige Sammelfrucht. Jedes Fruchtblatt springt in zwei Klappen auf und entläßt seine geflügelten Samen.
Fig. 636. Ribes rubrum. 2⁄3 nat. Gr. — Offizinell.
Fig. 637. Blütendiagramme von Rosaceen. A Sorbus domestica. B Prunus Padus. C Rosa tomentosa. D Sanguisorba officinalis. E Spiraea hypericifolia. Nach A. W. EICHLER.
Durch den unterständigen, meist aus fünf Fruchtblättern bestehenden, rings mit der ausgehöhlten fleischig anschwellenden Blütenachse verwachsenen, gefächerten, pergamentenen Fruchtknoten und freie Griffel von den sonstigen Rosaceen unterschieden sind die Gattungen Pirus, Cydonia u. a. Pirus malus, Apfelbaum (Fig. 524 3), Pirus communis, Birnbaum, unsere wichtigsten einheimischen Obstbäume, alte Kulturpflanzen in zahlreichen Varietäten. Cydonia vulgarus, die Quitte, mit einzeln stehenden großen hellrosa Blüten. Ihre apfel- oder birnförmigen, wollig-filzig behaarten Früchte sind roh ungenießbar, doch von höchst angenehmem Aroma. Mespilus germanica, der Mispelbaum; seine Früchte haben eine tiefe Grube am Scheitel, die rings von den Überresten der Kelchblätter umgeben ist. Die immergrüne japanische Mispel, Eriobotrya japonica, wird im Mittelmeergebiete häufig angepflanzt. Sorbus aucuparia, der Vogelbeerbaum, und Crataegus-Arten, Rotdorn, Weißdorn, sind teils als Alleebäume, teils in Hecken und als Zierbäume verbreitet (vgl. S. 262).
Fig. 638. Quillaja Saponaria. 4⁄5 nat. Gr. Nach A. MEYER und SCHUMANN. — Offizinell.
Fig. 639. Hagenia abyssinica. 1 Weibliche Blüte, e Außenkelch, f Kelch, g Korolle. Vergr. 4. 2 Frucht mit vergrößertem Außenkelch. Nat. Gr. Nach BERG und SCHMIDT. — Offizinell.
Fig. 640. Hagenia abyssinica. Zweigstück mit Blütenstand. 1⁄2 nat. Gr. Nach BERG und SCHMIDT. — Offizinell.
Eine krugförmig vertiefte Blütenachse, auf der ein bis viele freie Fruchtblätter stehen, die zu nußartigen, vom Blütenbecher umschlossenen Früchtchen werden, eignet der Gattung Rosa (Fig. 637 C). Ihr Blütenbecher wird fleischig (Fig. 583), und die kronblattartige Ausbildung zahlreicher Staubblätter gibt staminodial gefüllte Formen. Dagegen ist bei Agrimonia und Hagenia abyssinica der Blütenbecher hart. Hagenia, ein diözischer Baum Abessyniens, mit unpaarig gefiederten Blättern, deren Blattstiel durch Nebenblätter rinnig geflügelt wird, trägt reichverzweigte Blütenrispen. Die Einzelblüten mit zwei Vorblättern und Außenkelch werden durch Fehlschlagen eingeschlechtig; ihre Krone ist nach der Blüte hinfällig, der Kelch eingerollt, der Außenkelch vergrößert. Aus den zwei freien Fruchtblättern mit je einer Samenanlage wird eine einsamige Frucht (Fig. 639, 640). Die kronblattlose Alchimilla (Fig. 524, 2) und Sanguisorba officinalis mit köpfchenförmig gehäuften, polygamen, vierzähligen Einzelblüten ohne Außenkelch und Krone mit ein bis zwei Fruchtblättern (Fig. 637 D) sind stark reduzierte Formen.
Potentilla mit flachem Blütenboden, apokarpen Fruchtblättern und Außenkelch hat zahlreiche einheimische Arten. Geum und Dryas verbreiten ihre weichhaarigen, langauswachsenden Früchtchen durch den Wind. Fragaria, die Erdbeere, trägt kleine Nüßchen auf der fleischig geschwollenen Achse. Rubus, die Brombeere, ist in zahlreichen meist kletternden Arten verbreitet. Ihre Blätter sind stets dreizählig, ihre Früchte kleine Steinfrüchtchen, die in Sammelfrüchten beisammenbleiben. Eine der wenigen nicht kletternden Arten ist die Himbeere R. Idaeus.
Ein einziges Fruchtblatt, mittelständig auf flachschüsselförmig vertieftem Blütenbecher (Fig. 637 B) haben die Steinobstbäume: Prunus Cerasus, Sauerkirsche (Fig. 641). Prunus avium, Süßkirsche, Pr. domestica, Pflaume (Zwetsche); Pr. armeniaca, Aprikose, chinesischen Ursprungs, ebenso wie Pr. persica, Pfirsich; Pr. Amygdalus, Mandel, aus dem östlichen Mittelmeergebiete. Das fleischige Exokarp der Mandel trocknet beim Reifen und platzt auf, so daß das steinige Endokarp freigelegt wird.
Giftig: Die Samen vieler Rosaceen sind amygdalinhaltig; durch die entstehende Blausäure wirken Preßrückstände, z. B. von bitteren Mandeln, häufig giftig. Die Blätter des Kirschlorbeers, Prunus Laurocerasus, können aus gleichem Grunde ebenfalls Vergiftungen hervorrufen.
Fig. 641. Prunus Cerasus 2⁄3 nat. Gr. 1 Blühender Zweig. 2 Einzelblüte halbiert (etwas vergr.). 3 Fruchtstand. 4 Einzelfrucht halbiert. — Offizinell.
Offizinell: Pirus Malus: Extractum ferri pomati (Pharm. germ., helv.). — Cydonia vulgaris liefert Semen Cydoniae (Pharm. helv.). — Hagenia abyssinica: Flores Koso (Pharm. germ., austr., helv.). — Rosa centifolia und R. gallica: Flores Rosae (Pharm. germ., austr., helv.); dieselben und andere Arten: Ol. Rosae (ibid.). — Rubus Idaeus: Syrupus R. Idaei (Pharm. germ., austr., helv.). — Prunus Amygdalus: Amygdalae dulces und A. amarae, Oleum Amygdalarum (Pharm. germ., austr., helv.). — Pr. domestica: Pulpa prunorum (Pharm. austr.). — Pr. Laurocerasus: Aqua Laurocerasi (Pharm. austr., helv.). — Pr. Cerasus: Syrupus Cerasorum (Pharm germ.). — Quillaja Saponaria: Cortex Quillajae (Pharm. germ., austr.). — Spiraea Ulmaria: Flos Spiraeae Pharm. helv.). — Rubus fruticosus: Folium Rubi fruticosi (Pharm. helv.). — Potentilla Tormentilla: Rhizoma Tormentillae (Pharm. helv.).
4. Ordnung. Leguminosae.
Das gemeinsame Kennzeichen aller Leguminosen ist in der Beschaffenheit ihres Fruchtknotens gegeben, der die Ordnung von den sonst nahe verwandten Rosifloren scharf unterscheidet. Er geht stets aus einem einzigen Fruchtblatt hervor, ist einfächerig und trägt die Samenanlagen in einer oder zwei Reihen an der nach hinten gekehrten Bauchnaht (Fig. 642, 645, 650). Meist wird die Frucht eine Hülse (Legumen), die an der Bauchnaht und in der Rückenlinie in zwei Klappen aufspringt (wie die Erbsen). Wechselständige, zusammengesetzte Blätter mit Nebenblättern sind fast allen Leguminosen eigen. Sehr viele besitzen Blattgelenke (Fig. 643), welche Variationsbewegungen ermöglichen.
Die 1. Familie Mimosaceae enthält Bäume und aufrechte oder kletternde Sträucher mit paarig doppeltgefiederten Blättern und strahligen. fünf- oder vierzähligen Blüten (Fig. 642). Die Knospenlage von Kelch und Krone ist klappig. Die freien, halb-, voll- oder meist überzählig vorhandenen Staubblätter bedingen durch ihre bedeutende Länge oder große Zahl die Blütenfarbe. Ihre Pollenkörner bleiben häufig in Tetraden oder zu mehreren vereinigt. Die Blüten stehen in Ähren oder Köpfchen zu vielen beisammen. ihre Krone ist unscheinbar, der Embryo gerade.
Fig. 642. Blütendiagramme von Mimosaceen. A Von Mimosa pudica. B Von Acacia lophantha. Nach A. W. EICHLER.
Fig. 643. Acacia nicoyensis aus Costa Rica. I Stammstück mit Dornen (D) und einem Blatte. Die hohlen Dornen werden von Ameisen angebohrt und bewohnt. L Eingangsöffnungen. An den basalen Blattfiederchen die Futterkörper F. Auf dem Blattstiel bei N ein Nektarium. Verkleinert. II Einzelnes Blattfiederchen mit dem Futterkörper F, etwas vergrößert. Nach F. NOLL.
Die in den Tropenwaldungen reich entwickelte Familie besitzt in Europa keinen einheimischen Vertreter. Mimosa pudica, die Sinnpflanze (Fig. 292), mit hochgradiger Empfindlichkeit gegen Berührung, ist ein pantropisches Unkraut. Die Gattung Acacia ist in zahllosen Arten in den Tropen und Subtropen der alten und neuen Welt verbreitet. Ihre australischen Formen sind durch den Besitz von Phyllodien ausgezeichnet deren vertikale Stellung wesentlich zum eigenartigen Habitus der australischen Wälder mit beiträgt (vgl. Fig. 190). Einige amerikanische Akazien-Arten werden von Ameisen bewohnt (Fig. 643), denen sie in großen Nebenblattdornen Wohnung, in den BELTschen Körperchen[479] an den Enden der Fiederblättchen Nahrung bieten, ohne daß ein symbiotisches Gegenseitigkeitsverhältnis nachweisbar ist. Durch Lieferung von Gummi und reichen Gehalt an Gerbstoffen, teils in der Rinde, teils im Extrakt des Kernholzes, teils in den Hülsen, gewähren zahlreiche Acacia-Arten einen erheblichen Nutzen.
Offizinell: Durch Desorganisation des Stammparenchyms liefern Acacia Senegal (Nilländer und Senegambien) und andere Arten: Gummi arabicum (Pharm. germ., austr. helv.), das aus Wunden als dicke Flüssigkeit herausfließt und erhärtet. — Catechu (Pharm. germ., austr., helv.) ist ein Dekokt aus dem Kernholze der ostindischen Acacia Catechu (Fig. 644) und Ac. Suma.
Die 2. Familie Caesalpiniaceae umfaßt Bäume oder Sträucher mit einfach oder doppelt paarig gefiederten Blättern. Ihre Blüten sind meist etwas dorsiventral mit dachig aufsteigender Knospendeckung der Krone, deren Blattzahl ebenso wie die der freien Staubblätter häufig unvollzählig ist (Fig. 645). Typisch: K5, C5, A5 + 5, G̱1. Auch hier ist der Embryo gerade. In den Tropen und Subtropen ist die Familie reich ausgebildet.
Fig. 644. Acacia Catechu. 2⁄3 nat. Gr. Nach A. MEYER und SCHUMANN. — Offizinell.
Fig. 645. Blütendiagramme von Caesalpiniaceen. A Cercis siliquastrum. B Tamarindus indica. Nach A. W. EICHLER.
Bei Cassia angustifolia sind Kelch und Kronblätter frei und in Fünfzahl vorhanden (Fig. 646), die unteren deckenden Kronblätter etwas größer als die oberen. Von zehn Staubblättern sind die drei oberen kurz und unfruchtbar, sieben nach unten bogig gestreckte nehmen von oben nach unten an Länge zu. Ihre Antheren öffnen sich mit endständigen Poren. Der Fruchtknoten ist eine breite und flach zusammengedrückte Hülse. Derartige Blüten stehen in blattachselständigen Trauben beisammen an dem etwa meterhohen, mit lebhaft grünen, paarig gefiederten Blättern besetzten Strauche. Am Grunde des Blattstieles stehen zwei kleine Nebenblättchen. Tamarindus indica (Fig. 647), ein schöner Baum des tropischen Afrika, wird in den gesamten Tropen jetzt vielfach angepflanzt. Mit einfach paarig gefiederten Blättchen besetzte Seitenzweige bringen die Blütentrauben endständig. Aus den stark dorsiventralen Einzelblüten geht eine vom Typus abweichende Frucht hervor. Ihre Wandung differenziert sich in ein äußeres brüchiges Exokarp, ein fleischiges musartiges Mesokarp M und ein festes, die einzelnen mehr oder minder zahlreichen Samen umhüllendes, aus Steinzellen bestehendes Endokarp (Fig. 648). Kaum merklich dorsiventral sind die kronblattlosen Blüten von Copaifera, in denen auf 4 Kelchblätter sogleich 8–10 freie Staubblätter folgen. Die einsamige Frucht öffnet sich bei der Reife. Ein fleischiger, unregelmäßig begrenzter Arillus umhüllt den Samen einseitig. Einheimische Caesalpiniaceae fehlen; der im Mittelmeer beheimatete Johannisbrotbaum Ceratonia Siliqua, wird im Kalthause, die kauliflore (vgl. S. 573) Cercis siliquastrum (Fig. 645 A) und Gleditschia triacanthos (N.-Am., Fig. 198) werden als Zierpflanzen bei uns kultiviert.
Fig. 646. Cassia angustifolia. 2⁄3 nat. Gr. Nach A. MEYER und SCHUMANN. — Offizinell.
Offizinell: Folia Sennae (Pharm. germ., austr., helv.), Fiederblättchen von Cassia angustifolia; Pharm. helv. läßt auch Fol. S. Alexandrinae von C. acutifolia zu. — Cassia obovata und C. acutifolia: Fructus Sennae (Pharm. austr., helv.). — Cassia Fistula (tropisches Amerika): Fructus Cassiae Fistulae (Pharm. austr., helv.). — Copaïfera-Arten (Bäume des tropischen Amerika) enthalten in Balsamgängen des Holzes: Balsamum Copaïvae (Pharm. germ., austr., helv.). — Rad. Ratanhiae (Pharm. germ., austr., helv.) von Krameria triandra, einem Strauch der Kordilleren mit silberweißen, einfachen Blättern, dessen Blüten völlig abweichen; sie haben innen lebhaft gefärbte Kelchblätter, eine kleine Krone und drei Staubblätter mit Porenöffnung am Scheitel. Ihre Früchte sind kugelig und mit Stacheln besetzt (Fig. 649). — Lignum Haematoxyli (Pharm. austr.), Kernholz von Haematoxylon campechianum (tropisches Amerika). — Pulpa Tamarindorum (Pharm. germ., austr., helv.), das musartige Mesokarp der Frucht von Tamarindus indica (Fig. 648).
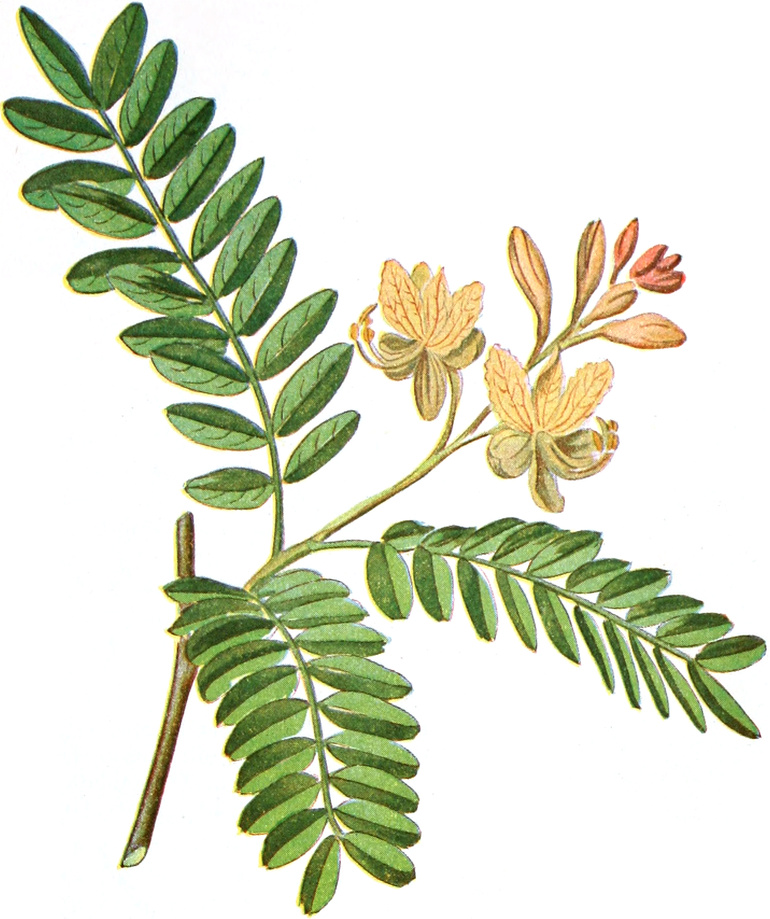
Fig. 647. Tamarindus indica. 4⁄5 nat. Gr. Nach A. MEYER und SCHUMANN. — Offizinell.