ERSTER TEIL Allgemeine Botanik. (continued 2)
Reading edition
Die in Meristemen bei den Zellteilungen entstehenden neuen Zellwände sind sehr häufig ebenflächig und werden in der Regel, doch nicht immer, senkrecht zu den schon vorhandenen älteren Zellwänden gestellt (Regel der rechtwinkligen Schneidung), wobei die Richtungen: mehr oder weniger parallel zur Organoberfläche (perikline Zellwände) und senkrecht dazu (antikline Wände) bevorzugt werden.
B. Die Dauergewebe.
Die Dauergewebszellen unterscheiden sich von den embryonalen Zellen dadurch, daß in ihnen im allgemeinen keine Zellteilungen mehr stattfinden, daß sie meist viel größer, verhältnismäßig plasmaarm und reich an großen Vakuolen oder gar tot sind, und daß ihre Zellhäute verschiedenartig verdickt und oft chemisch verändert sind. Meist wird das Dauergewebe von Interzellularen durchzogen. Es besteht gewöhnlich aus verschiedenen Zell- und Gewebearten, die auch ganz verschiedenen Funktionen dienen.
Das Dauergewebe geht dadurch aus den embryonalen Zellen hervor, daß letztere sich strecken, stellenweise auseinander weichen, ihre Zellwände verdicken und chemisch verändern, ihren Zellinhalt eigenartig weiter ausgestalten, oft auch einbüßen, und unter Umständen miteinander durch Auflösung der trennenden Wände verschmelzen. Das Streckungswachstum vollziehen die embryonalen Zellen oft ganz unabhängig voneinander (Fig. 172), so daß einzelne, die sich besonders stark strecken, sich mit ihren Enden oder ihren Kanten zwischen andere und aneinander vorbeischieben (gleitendes Wachstum[46].
Man kann die Dauergewebe in verschiedener Weise einteilen, einmal nach ihrer Herkunft. Primäre Dauergewebe sind solche, die aus den Urmeristemen hervorgehen; die sekundären sind solche, die den sekundären Meristemen ihre Entstehung verdanken.
Eine morphologisch brauchbarere Einteilung der Dauergewebe gewinnen wir, wenn wir sämtliche Verschiedenheiten der Dauerzellen, der Zellarten, in Betracht ziehen, die sie zusammensetzen.
Früher berücksichtigte man dabei hauptsächlich die Dimensionen der Zellen und unterschied Parenchyme und Prosenchyme. Parenchym nannte man ein Zellgewebe, dessen Zellen isodiametrisch sind oder, falls sie in einer Richtung gestreckt sind, mit queren Wänden aneinander grenzen; als Prosenchyme dagegen bezeichnete man solche Dauergewebe, die aus gestreckten, beiderseits zugespitzten, also spindelförmigen oder faserförmigen und mit ihren zugespitzten Enden fest zwischeneinander greifenden Elementen bestehen. Diese beiden Gruppen genügen aber nicht, um eine Übersicht über die Mannigfaltigkeit der Gewebearten zu ermöglichen. Ja selbst ihre Begriffsbestimmungen sind veraltet.
Untersucht man vergleichend die höheren Gewächse, so findet man zunächst Gewebe, die, wie die Gewebe der niedersten vielzelligen Pflanzen, aus lebenden, nährstoffhaltigen Zellen mit meist ziemlich dünnen Zellulosewänden bestehen und vielseitige Funktionen haben; wir wollen sie auch als Parenchyme bezeichnen. Daneben finden wir aber Gewebe, die sich durch ihre Baueigentümlichkeiten scharf von den Parenchymen unterscheiden und besonderen Funktionen dienen. Die auffälligsten Gewebe sind nach ihren Hauptfunktionen die Abschlußgewebe, die mechanischen oder Festigungsgewebe und die Leitgewebe. Als besondere Gewebe kann man weiter noch die Sekretgewebe und die Drüsengewebe betrachten. Die Parenchyme bilden das parenchymatische System, das primäre Abschlußgewebe das Hautgewebesystem, die Festigungsgewebe das mechanische und die Leitgewebe das Leitbündelgewebesystem.
Nicht selten begnügt man sich auch mit der Einteilung aller Dauergewebe in Haut-, Leitbündel- und Grundgewebesystem.
1. Parenchym, Parenchymsystem. Bezeichnend für diese Gewebeart, die zu den phylogenetisch ältesten Geweben (vgl. S. 38) gehört, ist die Parenchymzelle. Sie kann isodiametrisch oder gestreckt sein, hat verschiedenen Umriß und wird (vgl. Fig. 3 B, Fig. 40, 41) durch die folgenden Merkmale gekennzeichnet: Die wenig verdickte Zellmembran bereitet dem Stoffaustausche keine Schwierigkeiten; sie besteht in der Regel aus Kohlehydratlamellen. Sie besitzt außerdem einfache runde oder elliptische Tüpfel, die den Stoffverkehr zwischen den Zellen noch mehr erleichtern. Lebendes Protoplasma ist meist vorhanden; es umschließt große Vakuolen, die in Menge Nährstoffe enthalten können. Die Chromatophoren, die meist als Leuko- oder Chloroplasten ausgebildet sind, enthalten oft mehr oder weniger Stärke. Das Parenchym ist zur Durchlüftung meist von Interzellularen durchzogen. Es kann ebensogut sekundäres wie primäres Dauergewebe sein. Die Parenchymzelle dient, wie schon erwähnt, noch vielerlei Funktionen. In ihr spielen sich die wichtigsten Lebensvorgänge der ausgewachsenen Pflanze ab: die Nährstoffbereitung, -leitung und -speicherung, die Atmung und die Wasserspeicherung; außerdem dient sie infolge ihrer prallen Füllung mit Zellsaft der allgemeinen Festigung des Pflanzenkörpers. Entsprechend der Vielseitigkeit der Leistungen ergeben sich kleine Bauverschiedenheiten zwischen den Parenchymzellen, je nach der Funktion, der sie hauptsächlich dienen. Sind die Zellen reich an Chloroplasten, so nennt man das Parenchym Assimilationsparenchym (Fig. 8), entsprechend seiner wichtigsten Aufgabe: aus Kohlensäure organische Substanz zu bilden. In dieser Weise ist das Parenchym vielfach in oberirdischen Pflanzenteilen ausgebildet, soweit das Licht in sie einzudringen vermag. Weiter im Innern liegen farblose Parenchyme. Sind sie besonders reich an organischen Inhaltsstoffen, wie Zucker, Stärke, fetten Ölen und Eiweißstoffen, oder in den alsdann stark verdickten Zellmembranen an Hemizellulosen (Fig. 39), lauter Stoffen, die aufgespeichert sind, um später wieder in den Stoffkreislauf gezogen zu werden, so spricht man von Speichergewebe (Fig. 23 A, 24). Parenchym, das der Wasserspeicherung dient, bezeichnet man als parenchymatisches Wassergewebe; es besteht gewöhnlich aus besonders großen, plasmaarmen, aber sehr zellsaftreichen, häufig mit dünnem Schleime gefüllten, dünnwandigen Zellen, die sich bei Wasserabgabe stark verkleinern. Die Leitung organischer Nährstoffe, namentlich der Kohlehydrate, findet in Parenchymzellen statt, die zur Erleichterung des Stofftransportes meist in der Hauptleitungsrichtung langgestreckt sind, dem Leitparenchym, das oft in mantelförmigen lückenlosen Scheiden um andere Gewebemassen auftritt. Parenchym, das von besonders großen Interzellularen zur starken Durchlüftung oder Luftspeicherung durchzogen ist, heißt Aërenchym (Durchlüftungsgewebe).
2. Abschlußgewebe. In vielzelligen Gewebekörpern besteht, namentlich bei Landpflanzen, die Notwendigkeit, den ganzen Körper oder einzelne Gewebe gegen schädliche Wasserverluste, gegen mechanische Verletzungen, gegen zu hohe Erwärmung[47] und oft auch gegen Verluste von diffusiblen Nährstoffen zu schützen. Diese Aufgabe haben Zellen, die meist in Schichten (Scheiden) angeordnet sind, durch besondere Baueigentümlichkeiten erhalten. Dadurch ist eine Reihe weiterer Gewebearten entstanden, deren Hauptelemente die Epidermiszellen und die verkorkten Zellen sind. Die Epidermiszellen bilden die Epidermis und zusammen mit anderen Zellarten das Hautgewebesystem.
a) Hautgewebesystem. 1. Epidermis. Die Epidermis oder Oberhaut geht stets aus oberflächlich gelegenen Urmeristemschichten (dem Dermatogen, vgl. S. 74) hervor, ist also ein primäres Dauergewebe. Sie schließt als eine schützende Hülle den Pflanzenkörper nach außen ab, vermittelt aber zugleich den Stoffaustausch mit der Außenwelt. In typischer Ausbildung ist sie fast immer einschichtig (Fig. 45 B) und besteht aus lückenlos zu einer abziehbaren Haut miteinander verbundenen, in Flächenansicht tafelförmigen oder auch langgestreckten lebenden Zellen, deren seitliche Umrisse meist wellig (Fig. 43) oder zackig sind, was die Festigkeit ihres seitlichen Verbandes erhöht. Im Querschnitt sind die Zellen tafel-, linsen- oder pflastersteinförmig. Die Protoplasten der Oberhautzellen sind gewöhnlich auf dünne Wandbeläge beschränkt, ihre großen Safträume meist mit farblosem, manchmal aber auch gefärbtem Zellsafte gefüllt. Die Epidermis am Lichte wachsender Teile der meisten Farne, doch auch einer großen Zahl von Schatten liebenden Phanerogamen, ist mit Chlorophyllkörnern ausgestattet und alsdann auch an der Assimilationsarbeit der Pflanze beteiligt. Bei fortgeschrittenerer Arbeitsteilung unterbleibt aber auch an oberirdischen Organen die Ausbildung der Chlorophyllkörner in der Epidermis.
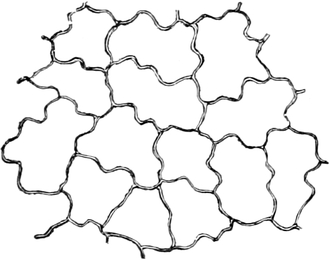
Fig. 43. Flächenansicht der Epidermis auf der Blattoberseite von Mercurialis perennis. Vergr. 300. Nach H. SCHENCK.
Alle für längere Lebensdauer eingerichteten, oberirdischen Pflanzenteile haben, im Gegensatz zu den vergänglichen Blumenblättern, verdickte Epidermisaußenwände. Diese Verdickung kommt durch Anlagerung von Zelluloseschichten zustande, von denen namentlich die äußeren hierauf meist, doch nicht immer, mehr oder weniger stark kutinisieren (Fig. 188). Die Kutinisierung kann sich auch auf die mittleren Lamellen der Seitenwände erstrecken. An den unter Wasser lebenden und unterirdischen Pflanzenteilen, vor allem also den Wurzeln, bei denen die Oberhaut oft besondere Funktionen, z. B. die Absorption von Wasser und Salzen hat, sind die Außenwände dagegen dünn und nicht kutinisiert.
Die Außenwände der Epidermen, mögen sie verdickt oder unverdickt sein, sind außerdem, abgesehen von den Wurzeln, auf ihrer Außenseite von einem zarten Kutinhäutchen, der Kutikula, bedeckt, das ununterbrochen über sie fortläuft und auf den primären Außenwänden der Epidermiszellen entsteht. Häufig ist die Kutikula ohne Rücksicht auf die Zellgrenzen etwas gefältelt; sie sieht alsdann in Flächenansicht gestreift aus. Die Kutikula und die kutinisierten Schichten sind infolge ihres Gehaltes an Kutinen für Wasser und Gase schwer durchlässig, und zwar um so schwerer, je dicker sie sind; sie verhindern in wirksamster Weise schädliche Wasserverluste des Gewebekörpers durch Verdunstung. Die Verdickung erhöht zugleich die mechanische Festigkeit der Oberhautzellen. Den Wurzeln wird durch den Mangel der Kutikula die Aufnahme des Bodenwassers und der Bodensalze erleichtert.
In die Kutikula und in die kutinisierten Membranschichten ist oft noch Wachs eingelagert, das sie noch weniger durchlässig für Wasser macht. Von solchen Epidermen fließt das Regenwasser ab, ohne sie zu benetzen. Tritt das Wachs aus der Kutikula nach außen hervor, so entstehen Wachsüberzüge, die an Früchten, so besonders auffällig an Pflaumen, Weinbeeren und anderen Organen einen hellgrauen, abwischbaren Reif bilden. Sie können aus Körnchen (so z. B. bei den Pflaumen und Weinbeeren), kürzeren oder längeren Stäbchen (Fig. 44) oder Krusten bestehen und lösen sich in Äther oder in heißem Alkohol.
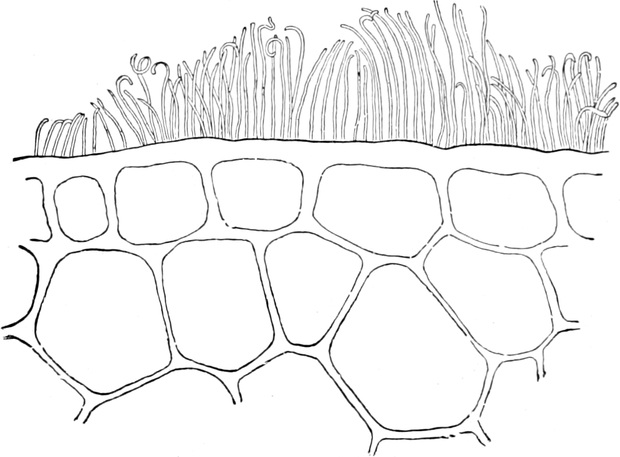
Fig. 44. Querschnitt durch einen Stengelknoten des Zuckerrohrs mit stäbchenförmigen Wachsausscheidungen. Vergr. 540. Nach STRASBURGER.
Das Pflanzenwachs besteht gleich den Suberinen und Kutinen aus Fettsäureestern des Glyzerins, denen aber freie höhere Fettsäuren und Fettsäureester anderer Alkohole beigemischt sind.
Vielfach schützt die Epidermis das umschlossene Gewebe nicht nur gegen schädliche Wasserverluste durch Erschwerung der Wasserdampfabgabe, sondern auch dadurch, daß sie ein Wasserbehälter ist: Die meist unverdickten Seitenwände legen sich bei Abgabe des Wassers, das im Zellraume gespeichert ist, in Falten, um sich wie in einem Blasebalge bei neuer Füllung der Zellen wieder zu strecken. Solche Epidermen sind manchmal auch mehrschichtig.
Die Widerstandsfähigkeit der Epidermisaußenwände wird in bestimmten Fällen durch Einlagerung von Kalk oder Kieselsäure erhöht. Bei den Schachtelhalmen (Equiseten) ist die Verkieselung so stark, daß man sie zum Polieren von Zinngefäßen nutzbar machen kann. Die Fruchtschale der Graminee Coix Lacryma ritzt sogar Opal.
Eine besondere Mannigfaltigkeit in der Art der Verdickung und in dem Verhalten der Verdickungsschichten findet man an den Epidermiszellen der Früchte und häufiger noch der Samen. Die Epidermen besorgen hier nicht allein den Abschluß der inneren Teile, sondern fördern vielfach auch die Verbreitung und Befestigung der Früchte und Samen, oder sie bilden druckfeste Samenschalen.
2. Spaltöffnungsapparate[48]. Bei den höher organisierten Gewächsen sind sehr bezeichnend für die Epidermen der meisten oberirdischen, namentlich grünen Teile, die in der Luft und nicht in Wasser wachsen, Paare gekrümmter, halbmondförmiger Zellen, die eine Lücke, einen Spalt (Porus), zwischen sich lassen. Sie heißen Schließzellen und samt den Spalten Spaltöffnungen (Stomata) oder Spaltöffnungsapparate (Fig. 45 A, 46). Die größten Spaltöffnungsapparate hat man bei den Gräsern beobachtet, so beim Weizen von 0,079 mm Länge und 0,039 mm Breite mit einer 0,038 mm langen und 0,007 mm breiten Spalte. In der Epidermis der Wurzeln kommen dagegen solche Spaltöffnungen niemals vor.
Der Spalt unterbricht die lückenlose Schicht der Epidermiszellen; er ist ein mit Luft gefüllter Interzellulargang, der unter der Oberhaut in einen großen Interzellularraum (Fig. 45 B) mündet, den man Atemhöhle genannt hat, obwohl er mit Atmung nichts zu tun hat. Dieser Raum steht mit den Interzellularen des Parenchyms in Verbindung. Die Spalten sind für die Pflanzen von größter Bedeutung; denn sie setzen das Interzellularsystem, das der Durchlüftung der Gewebe dient, in Verbindung mit der Außenluft. Solche Verbindungen sind aber wegen des lückenlosen Verbandes der Epidermiszellen, wenn diese infolge der Ausbildung einer Kutikula für Gase schwer durchlässig sind, unbedingt nötig, damit die Interzellularenluft genügend schnell erneuert, in den grünen Pflanzenteilen namentlich die verbrauchte Kohlensäure ersetzt werden kann. Dagegen vermag der in der Luft reichlich vorhandene Sauerstoff auch durch die Epidermiszellen, selbst wenn sie von einer Kutikula überzogen sind, meist in hinreichender Menge in die Pflanzenteile einzudringen.
Die Schließzellen enthalten stets Chlorophyll und zeichnen sich, abgesehen von ihrer Form, durch ihre Wandverdickungen aus, die an Querschnitten (Fig. 45 B, 47 B) kenntlich werden. Diese Verdickungen bestehen meist aus je einer oberen und unteren Verdickungsleiste an der Spaltseite (der Bauchseite) der Schließzellen, während die Wand dort in halber Höhe ebenso wie die ganze Rückenwand dünn bleibt (Fig. 45 B). Die Verdickungen haben zu den Gestaltsänderungen, zu denen die Schließzellen befähigt sind, Beziehung. Die Schließzellen haben nämlich die Aufgabe, durch solche Gestaltsveränderungen die Spaltenweite zu verändern: durch Verringerung ihrer Krümmung den Spalt z. B. etwa zu Zeiten allzu großen Wasserverlustes zu schließen, durch Zunahme ihres Volumens und Verstärkung ihrer Krümmung ihn zu anderen Zeiten weit zu öffnen. Sie sind Regulatoren des Gasaustausches und der Transpiration.
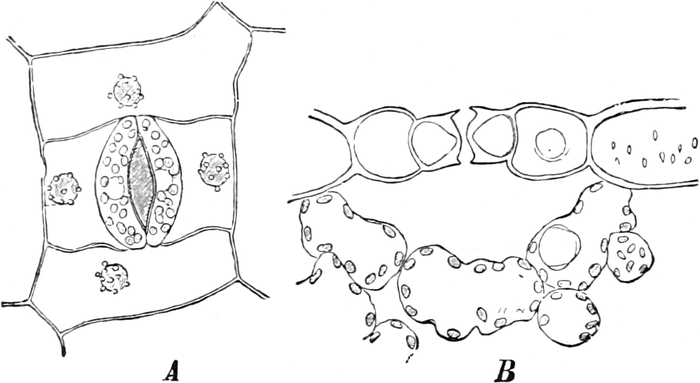
Fig. 45. Epidermis der Blattunterseite von Tradescantia virginica. A In Flächenansicht von außen, B im Querschnitt. Vergr. 240. Nach STRASBURGER.
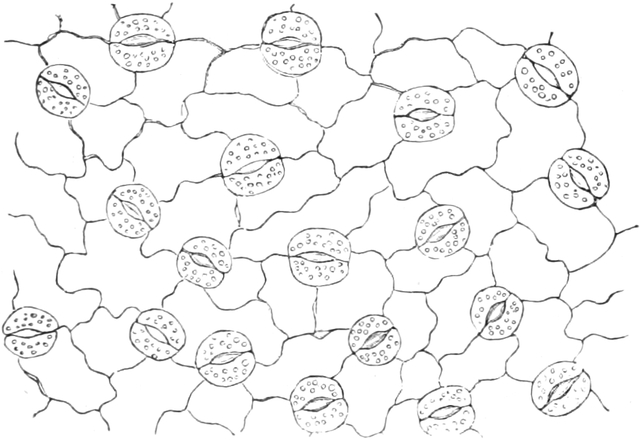
Fig. 46. Epidermis mit Spaltöffnungen auf der Blattunterseite von Helleborus niger. Vergr. 120. Nach STRASBURGER.
Wie unser Querschnitt in Fig. 45 B lehrt, springen die Verdickungsleisten der Schließzellen über und unter der Spalte vor. So erweitert sich die Spaltöffnung meist oberhalb der Zentralspalte zum sog. Vorhofe, unter ihr zum Hinterhofe. An den Einfügungsstellen der Schließzellen verdünnt sich die verdickte Außenhaut der angrenzenden Epidermiszellen oft plötzlich, wodurch gewissermaßen Scharniere, Hautgelenke, entstehen, die den Schließzellen die Gestaltsveränderungen erleichtern (vgl. Fig. 47 B). Häufig werden die Schließzellen, wie in Fig. 45 A zu sehen ist, von besonderen, schwächer verdickten oder weniger hohen Epidermiszellen umgeben, den Nebenzellen der Spaltöffnungsapparate.
Der Bau der Schließzellen und in Abhängigkeit davon auch die Mechanik ihrer Öffnungs- und Schließbewegungen ist übrigens verschieden. Zwei Hauptarten der Spaltöffnungsapparate lassen sich dementsprechend unterscheiden, die aber durch Übergänge miteinander verbunden sind: beim ersten Typus ändern die Schließzellen ihre Form hauptsächlich parallel zur Epidermisoberfläche, beim zweiten dagegen senkrecht zur Epidermis. Typus I. Je nach dem Bau der Schließzellen kann die Spalte wieder in verschiedener Weise geöffnet werden. a) Amaryllideentypus (Fig. 47, bei den meisten Mono- und Dikotylen ausgebildet). Die Rückenwand jeder Schließzelle (Fig. 47 B) ist unverdickt, die Bauchwand dagegen verdickt, und zwar meist durch eine obere und untere Verdickungsleiste. Nimmt der Turgor der Zelle zu, so wird die dünne Rückenwand stärker gedehnt als die verdickte Bauchwand, und die Zelle, die im wenig gedehnten Zustand kaum gekrümmt war, wird in tangentialer Richtung halbmondförmig gekrümmt. b) Gramineentypus (Fig. 48, bei den Gramineen und Cyperaceen). Die Schließzelle hat hantelförmige Gestalt. Die erweiterten Enden sind dünnwandig, das schmalere mittlere Verbindungsstück dagegen hat sehr stark verdickte Außen- und Innenwände (Fig. 48 B). Bei der Turgorzunahme der Zelle werden die eiförmigen dünnwandigen Enden gedehnt und dadurch die starren Mittelstücke der Schließzellen in tangentialer Richtung voneinander entfernt. Typus II. Mniumtypus (Fig. 49, bei manchen Moosen und Farnen). Die Bauchwände der Schließzellen sind dünn, dagegen die Rückenwände verdickt, Außen- und Innenwände entweder verdickt oder unverdickt. Nimmt der Turgor in der Zelle zu, so entfernen sich die Außen- und Innenwände voneinander, wobei die Krümmung der dünnen Bauchwand abnimmt und die Spalte sich erweitert, während die Rückenwand ihre Lage nicht ändert. Einen Übergang zwischen Typus I und II stellen z. B. die Spaltöffnungsapparate von Helleborus dar (vgl. Fig. 238); hier werden die Schließzellen durch Dehnung der dünnen Rückenwände stärker halbmondförmig gekrümmt und zugleich die verdickten Außen- und Innenwände voneinander entfernt.
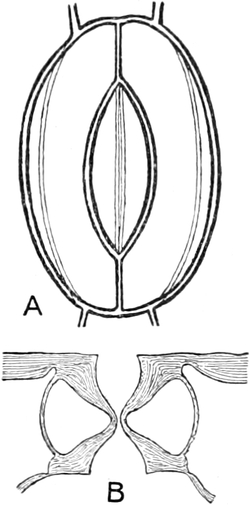
Fig. 47.
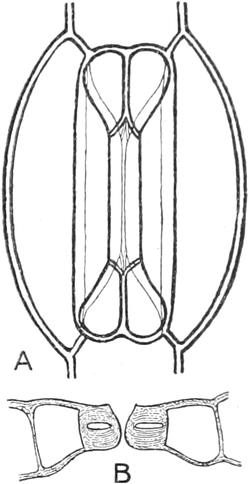
Fig. 48.
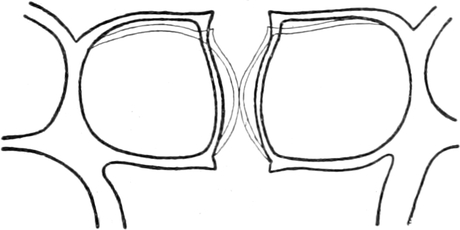
Fig. 49.
Fig. 47 bis 49. Typen von Spaltöffnungsapparaten. Die starken Linien geben die Formen der Schließzellen bei geöffneten Spalten, die dünnen Linien bei geschlossenen Spalten wieder. Fig. 47. Amaryllideentypus, A in Flächenansicht, B im Querschnitt. Fig. 48. Gramineentypus mit den beiden Nebenzellen, A in Flächenansicht, B im Querschnitt. Fig. 49. Mniumtypus im Querschnitt, nach HABERLANDT. Im übrigen vgl. den Text.
Die Schließzellen entstehen durch Teilung junger Epidermiszellen. Im einfachsten Falle zerfällt eine solche Zelle dabei in eine kleinere inhaltsreichere Zelle, die zur Schließzellenmutterzelle wird, und in eine größere inhaltsärmere, die sich zu einer gewöhnlichen Epidermiszelle oder zu einer Nebenzelle ausbildet. Die Mutterzelle rundet sich ellipsoidisch ab und teilt sich durch eine Längswand in die beiden Schließzellen. In der Längswand bildet sich hierauf der Spalt als schizogener Interzellulargang aus. Bei Spaltöffnungsapparaten mit Nebenzellen folgen mehrere Zellteilungen innerhalb einer jungen Epidermiszelle in bestimmter Weise aufeinander, bevor die Schließzellenmutterzelle entsteht, oder die Nebenzellen entstehen durch Teilungen von jungen Epidermiszellen, die an die Spaltöffnungen angrenzen.
3. Haare. Der Epidermis fast keiner Pflanze fehlen Haare (Trichome). Die Haare sind entweder einzellige Gebilde, und zwar papillen- (Fig. 50), schlauch- (Fig. 51) oder pfriemförmige (Fig. 52, 53, 56 links) Ausstülpungen der Epidermiszellen. Oder sie sind mehrzellig, nämlich Zellreihen, gestielte und ungestielte Zellflächen (Schuppenhaare, Fig. 55), die die Gestalt von Blättchen haben können, wie z. B. die Spreuschuppen der Farne, oder Zellkörper, die in der Epidermis befestigt sind. Auch die mehrzelligen Trichome gehen ausschließlich aus jungen Epidermiszellen, und zwar meist je aus einer solchen, der Initialzelle des Haares, durch Wachstum und Teilung hervor. Die einzelligen und mehrzelligen Haare sind ferner unverzweigt oder verzweigt (Fig. 54, Sternhaare); sie haben dünne und weiche Membranen oder stark verdickte, häufig verkalkte oder verkieselte Seitenwände und stechende Spitzen (Borstenhaare, Fig. 52 rechts); ihre Protoplasten sind entweder lebend, denen der Epidermiszellen ähnlich, oder abgestorben. Abgestorbene Haarzellen, die (infolge totaler Lichtreflexion) meist weiß aussehen, sind mit Luft gefüllt oder seitlich zusammengedrückt (so an den langen einzelligen Haaren der Baumwollsamen, Fig. 53, aus denen man das Baumwollgewebe und die Watte macht). Stets wird an den Haaren der in der Epidermis steckende Teil als Fußstück von dem herausragenden Haarkörper unterschieden. Die Epidermiszellen, die das Fußstück umgeben, sind oft ring- oder strahlenförmig angeordnet; man nennt sie Nebenzellen des Haares. Sehr eigenartig gebaut sind die borstenförmigen Brennhaare, die sich bei den Brennesseln (Fig. 52) und den Loasaceen finden.
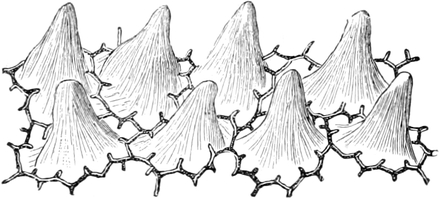
Fig. 50. Oberhaut vom Blumenblatte des Stiefmütterchens. Die Zellen mit faltenartigen Leisten an den Seitenwänden und mit vorspringenden Papillen. Vergr. 250. Nach H. SCHENCK.
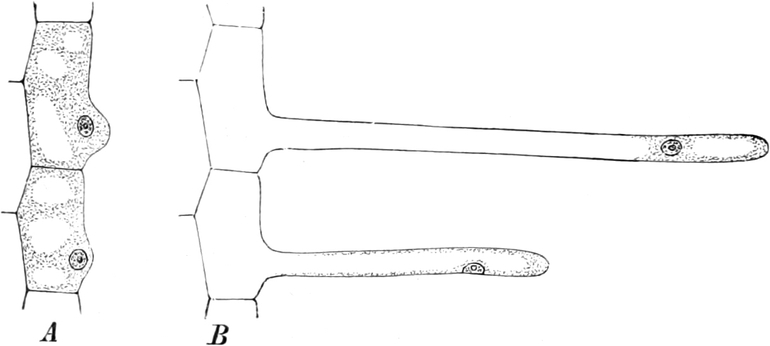
Fig. 51. Wurzelhaare (B) und ihre Entstehung (A), halb schematisch. Wurzelepidermis im Längsschnitt. Nach ROTHERT.
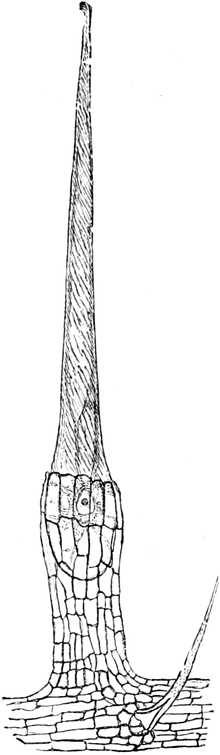
Fig. 52. Brennhaar von Urtica dioica, nebst einem Stück Epidermis, auf dieser rechts ein kleines einzelliges Borstenhaar. Vergr. 60. Nach STRASBURGER.
Sie gehen aus einer Epidermiszelle hervor, die während der Haarbildung stark anschwillt und von benachbarten Epidermiszellen becherförmig umwachsen wird. Durch Zellvermehrung in dem Gewebe, das an den Haarfuß angrenzt, erhält das Haar gleichzeitig einen säulenförmigen Stiel. Die Haarzelle spitzt sich oben zu und endet mit einem kleinen, schräg aufgesetzten Köpfchen. Unter diesem Köpfchen bleibt die Haarwandung unverdickt. Das glasartig spröde Ende des Haares ist verkieselt, die übrigen Wandteile bis auf die untere Anschwellung sind verkalkt. Wird das Köpfchen des starren Haares leise berührt, so bricht es ab; die Haarspitze erhält nun die Form einer Einstechkanüle und dringt in die Haut ein, in die der Inhalt des Haares sich ergießt. Dieser enthält ein sehr giftiges Toxin, das nach G. HABERLANDT eine eiweißähnliche Substanz ist und in der Wunde eine mit brennendem Schmerz verbundene Entzündung hervorruft. Sie kann, durch gewisse tropische Brennesseln verursacht, gefährlich werden und starrkrampfähnliche Zustände zur Folge haben.
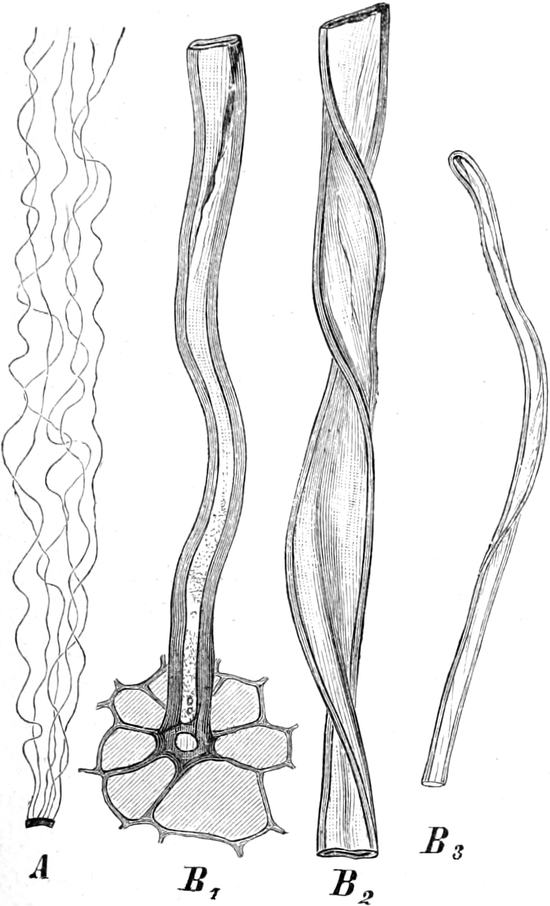
Fig. 53. Samenhaare der Baumwollpflanze. A Ein Stückchen der Samenschale mit Haaren, dreimal vergrößert. B1 Ansatzstelle und unterer Teil, B2, mittlerer Teil, B3 oberer Teil eines Haares. Vergr. 300. Nach STRASBURGER.
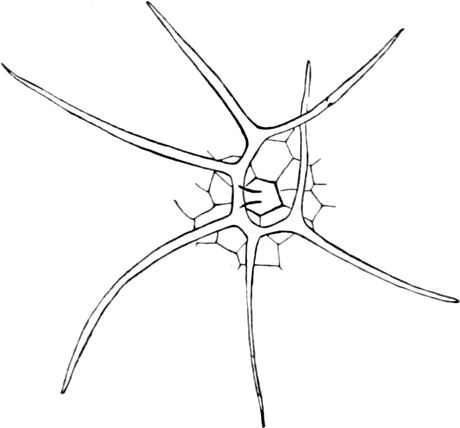
Fig. 54. Sternhaar in Flächenansicht, von der Blattunterseite der Levkoje (Matthiola annua). Vergr. 90. Nach STRASBURGER.
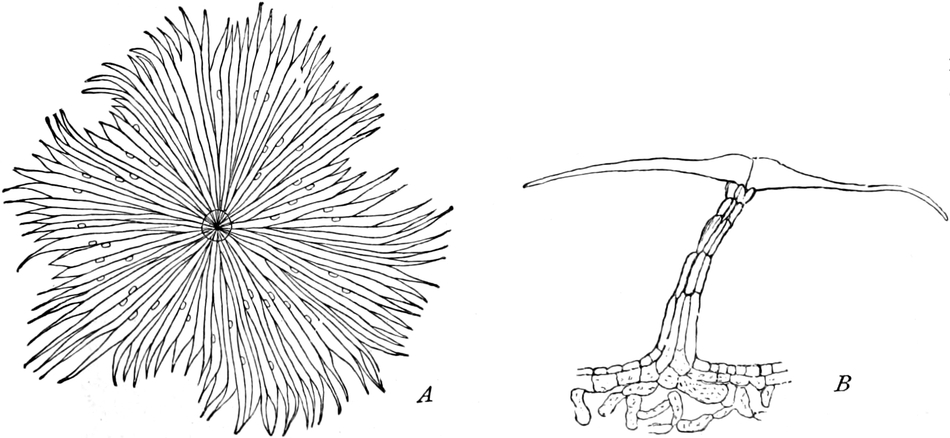
Fig. 55. Schuppenhaar, A in Flächenansicht, B im Längsschnitt von der Blattunterseite der Elaeagnacee Shepherdia canadensis. Vergr. 240. Nach STRASBURGER.
Die Haare haben also sehr verschiedenen Bau und sie haben auch recht verschiedene Funktionen. Vielfach unterstützen sie die Epidermis in ihren schützenden Aufgaben. Alsdann bilden sie Überzüge an ausgebildeten oder wachsenden Pflanzenteilen, besonders häufig aber in der Knospe an den jungen Pflanzenteilen, die sie umhüllen. Solche Überzüge, die seidig oder filzig sind, wenn sie aus abgestorbenen Wollhaaren bestehen, können die Transpiration herabsetzen und als Schirm gegen direkte Besonnung schützen. Die Wurzelhaare, schlauchförmige Ausstülpungen der lebenden Wurzelepidermiszellen (Fig. 51 B, 155 r), dienen der Wasseraufnahme. Drüsenhaare (Fig. 75, 76, 77) scheiden Stoffe sehr verschiedener Art aus.
In den Dienst der Aufnahme mechanischer Reize treten nach G. HABERLANDT[49] bestimmte plasmareiche Haare. Sie kommen an Staubgefäßen, Blumenblättern und Blattgelenken vor und haben eigenartigen Bau; sie werden als Fühlpapillen, Fühlhaare oder Fühlborsten bezeichnet.
4. Emergenzen. Ähnliche Funktionen wie viele Haare haben Auswüchse auf der Epidermis, an deren Bildung sich im Gegensatz zu den Haaren außer der Oberhaut noch mehr oder weniger tief reichende Teile des darunter liegenden Gewebes beteiligen. Man nennt sie Emergenzen. Bald sind es Haftorgane, bald Drüsen.
Nur wenige subepidermale Zellreihen setzen sich beispielsweise in die, sonst bloß aus Epidermis aufgebauten Auswüchse (Drüsenzotten) fort, die sich an den Enden und an den Zähnen der Nebenblätter des Stiefmütterchens (Viola tricolor) befinden (Fig. 56). Tiefer reichende Zellschichten sind hingegen am Aufbau jener Auswüchse beteiligt, die als ankerförmige Haftorgane den Früchten der Hundszunge (Cynoglossum) aufsitzen, über 1 mm Länge erreichen und der Verbreitung der Früchte durch Tiere dienen. Noch größere Emergenzen sind die Stacheln, die z. B. dem Rosenstrauch und den Brombeersträuchern beim Klettern behilflich sind.
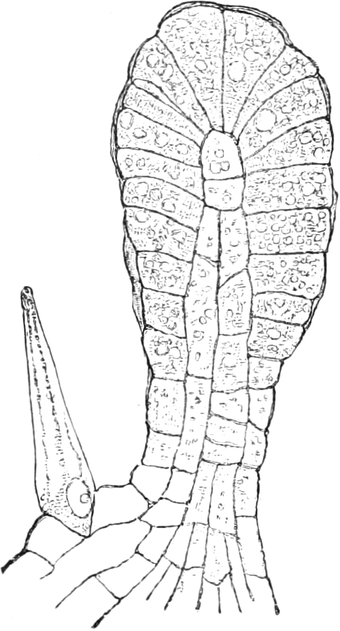
Fig. 56. Eine Drüsenzotte vom Nebenblatt der Viola tricolor, neben ihr ein einzelliges Haar. Vergr. 240. Nach STRASBURGER.
b) Abschlußgewebe aus verkorkten Zellen. In sehr vielen Fällen, namentlich wo die Epidermis nicht während der ganzen Lebensdauer des umschlossenen Organes lebt und tätig ist, wird der Abschluß des Körpergewebes nach außen, z. B. auch der Schutz gegen zu starke Erwärmung, noch viel wirksamer von Schichten verkorkter Zellen übernommen. Solche Zellen werden in Form von Schichten oder Scheiden sehr oft auch zur Abgrenzung und zum Abschlusse lebender Gewebemassen gegen andere im Innern des Körpers verwendet. Sie können primären oder sekundären Ursprungs sein. Die Verkorkung kommt dadurch zustande, daß in jeder Zelle an die zunächst unverkorkten Kohlehydratmembranen eine Suberinlamelle als sekundäre Verdickungsschicht angelagert wird, auf die noch tertiäre, nicht verkorkte Verdickungsschichten folgen können. Einige Schichten der Membranen sind oft verholzt. Wir können drei Arten verkorkten Abschlußgewebes unterscheiden: 1. das Kutisgewebe, 2. die Endodermis, 3. den Kork.
1. Das Kutisgewebe ist ein primäres Dauergewebe. Es entsteht durch manchmal schon sehr frühzeitige Verkorkung von Zellen, z. B. der Epidermis, oder dünnerer oder dickerer oft lückenlos verbundener Parenchymschichten. Kutisgewebe letzterer Art schließt in Form einer ein- oder mehrschichtigen Scheide nicht selten ältere Pflanzenteile (z. B. Wurzeln, deren Epidermis frühzeitig zugrunde geht, Fig. 156 ex) nach außen oder Gewebestränge im Innern des Pflanzenkörpers gegen das umliegende Gewebe ab. Die Kutiszellen behalten in der Regel ihren lebenden Inhalt.
An Stelle der Verkorkung kann manchmal auch die Einlagerung von Kutin oder anderen chemisch noch wenig erforschten Substanzen die Membranen schwer durchlässig für Wasser machen.
2. Endodermis. Diese Gewebeart wird aus den Endodermiszellen gebildet[50]. Die Endodermis tritt in Scheidenform auf; sie dient ebenfalls, und zwar besonders häufig, als einschichtige Schutzscheide der Abgrenzung und dem Abschlusse lebender Gewebemassen gegen andere im Innern des Körpers, doch auch als Abschluß nach außen. Sie ist bald primären, bald sekundären Ursprungs. Die prismatischen, langgestreckten Endodermiszellen sind lebende Zellen, die lückenlos zusammenschließen. In jugendlichem Zustande sind ihre Membranen noch nicht verkorkt; in den radialen Seitenwänden ist aber ein schmaler Membranstreifen in Form eines Bandes, das die Zelle rings umläuft und für gewisse, in Wasser gelöste Stoffe schwer durchlässig ist, durch Einlagerung eines noch nicht näher erkannten (holzähnlichen?) Stoffes eigenartig verändert (Fig. 57 A). Dieser Streifen erscheint im Querschnitte als dunkler Punkt oder als dunkles, linsenförmiges Gebilde (CASPARYscher Punkt, Fig. 57 B und Fig. 158 bei S), im radialen Längsschnitte als meist etwas welliges Band. In älteren Endodermiszellen wird wie bei den Kutiszellen an die Zellhaut ringsum eine sekundäre Verdickungsschicht aus Korksubstanz angelagert, der noch dicke tertiäre, oft stark verholzende Kohlehydratschichten folgen können.
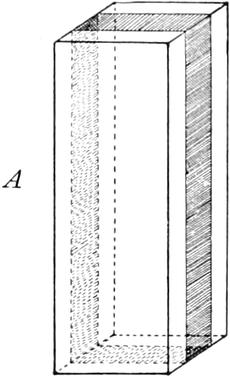
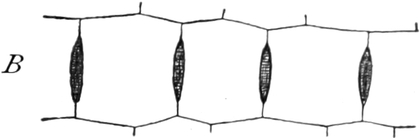
Fig. 57. A Schematische räumliche Darstellung einer Endodermiszelle mit dem CASPARYschen Streifen in den radialen Zellwänden. B Endodermis im Querschnitt. Der CASPARYsche Streifen erscheint in Form einer dunklen linsenförmigen Figur.
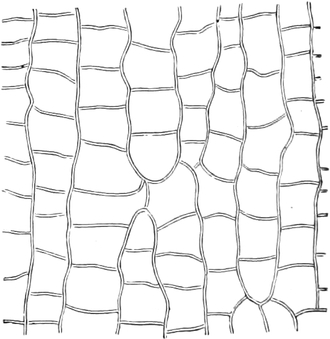
Fig. 58. Querschnitt durch Flaschenkork. Vergr. 120.
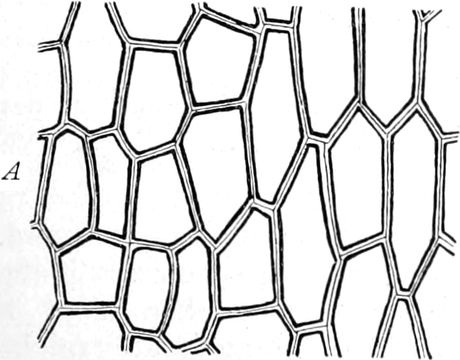
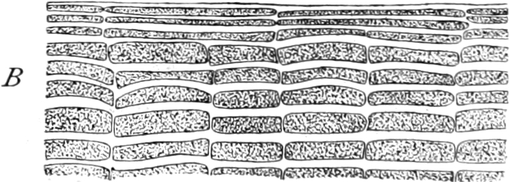
Fig. 59. A Tangentialer Schnitt, B Querschnitt durch die Korkhaut eines Lindenzweiges. Vergr. 120. Die Zellmembranen in B weiß, der abgestorbene Zellinhalt punktiert gezeichnet.
In einschichtiges Kutisgewebe und in die Endodermis sind nicht selten einzelne Zellen von abweichender Form mit unverkorkten Zellwänden zerstreut eingeschaltet, die man als Durchlaßzellen bezeichnet.
3. Kork. Wie die Epidermis und das Kutisgewebe stets primäre Dauergewebe sind, so ist der Kork immer ein sekundäres Gewebe, das der Tätigkeit eines sekundären Meristems, des Korkkambiums, seine Entstehung verdankt. Das Korkgewebe bildet wie die Epidermis in der Regel peripherische, aber mehrschichtige Scheiden in Form dünner grauer und glatter Korkhäute oder dicker, außen rissiger Korkkrusten aus regelmäßigen radialen Zellreihen (Fig. 58, 59) da, wo an ober- oder unterirdischen Pflanzenteilen die Epidermis abgestoßen oder lebendes Parenchym durch Verwundungen freigelegt wird. Die Korkzellen sind meist lufthaltige und durch den abgestorbenen Inhalt gebräunte Zellen. Sie haben meist prismatisch-tafelförmige Gestalt mit tangential gestellter Grundfläche (Fig. 59 A), schließen lückenlos zusammen und sind mit verkorkten sekundären Membranschichten versehen, während die Mittellamellen zwischen ihnen oft verholzt sind. Tertiäre Verdickungsschichten fehlen in ihnen oder bestehen aus Zellulose und bilden die sog. Zelluloseschicht, die übrigens auch verholzt sein kann. Schon dünne Korkhäute, die aus wenigen Zellschichten bestehen (Fig. 59), vermindern die Transpiration an der Oberfläche der Pflanzenteile sehr, und zwar infolge der allseitigen Verkorkung der Zellhäute begreiflicherweise viel stärker als die Epidermis; dickere Korklagen (Krusten) verhindern außerdem das Eindringen von Schmarotzern. Zudem besitzt Korkgewebe ein geringes Wärmeleitungsvermögen, schützt also wirksam gegen zu hohe Erwärmung.
Korkhäute überziehen viele ältere Stengel, Stämme, Knollen, Knospenschuppen und Früchte; aus einer Korkhaut besteht z. B. die Kartoffelschale. Die Korkeiche besitzt eine Korkkruste, aus der die Flaschenkorke hergestellt werden.
Die sehr selten getüpfelten Wände der fertigen Korkzellen bleiben entweder verhältnismäßig dünn (Fig. 58) oder werden mehr oder weniger stark verdickt (Fig. 59, 183 p). Stark verdickte Korkzellen bilden den Steinkork. Die Korkzellen können mit dem abgestorbenen, meist braunen Inhalt ganz angefüllt sein (Fig. 59 B).
Häufig wechseln im Korkgewebe Schichten verkorkter und unverkorkter Zellen miteinander ab. Letztere Schichten, deren Elemente sich nach Bau und Inhalt sonst nur wenig von den Korkzellen unterscheiden, dünn- oder dickwandig sind und ebenso wie diese entstehen, bezeichnet man als Phelloidgewebe.
Gewebemassen von noch verwickelterem Bau als der Kork bilden die Borke, die an älteren Stämmen und Wurzeln als Abschlußgewebe an Stelle des Korkes tritt (vgl. S. 139).
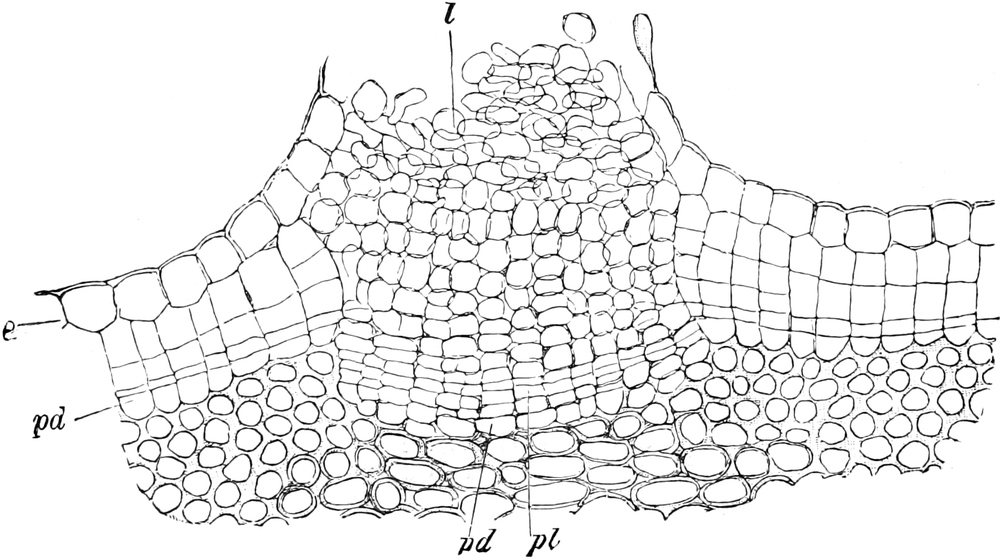
Fig. 60. Querschnitt durch eine Lentizelle von Sambucus nigra. e Epidermis, pc Korkkambium, pd aus dem Korkkambium nach innen abgeschnittene Parenchymzellen, pl Korkkambium der Lentizelle, l Füllzellen. Vergr. 90. Nach STRASBURGER.
Lentizellen. Durch die Bildung eines von Interzellularen freien Korkmantels an Stelle einer Epidermis würde der Gasaustausch zwischen der Atmosphäre und dem Innern des Stammes aufgehoben werden, wenn nicht für einen Ersatz der Spaltöffnungen gesorgt würde. Das geschieht bei manchen Pflanzen, z. B. Clematis-, Vitis-, Lonicera-Arten, durch Porenkork, d. h. dadurch, daß in die Korkhaut ovale oder rundliche, eng umschriebene Flecke aus etwas kleineren verkorkten Zellen eingeschaltet sind, die Interzellularen zwischen sich lassen, meist aber durch die Lentizellen: längliche oder spindelförmige, rauhe und poröse vorspringende Warzen, die man schon mit bloßem Auge auf den Korkhäuten der Zweige unserer Holzgewächse sehen kann. Sie bestehen aus abgestorbenem, meist unverkorktem und an Interzellularen reichem Gewebe (Füllzellen), das pfropfenartig in das Korkgewebe eingesetzt ist (Fig. 60). Die Interzellularen münden in die Außenluft und setzen sich in das Interzellularsystem des lebenden Gewebes fort.
Die Lentizellen entstehen oft unter den Spaltöffnungen, und zwar sogleich zu Beginn der Korkbildung. Das Korkkambium, das auch unter den Spaltöffnungsapparaten auftritt, hier aber radial verlaufende Interzellularen zwischen seinen Zellen enthält, bildet an diesen Stellen (Fig. 60 pl) nach außen die Füllzellen mit Interzellularen (Fig. 60 l). Die Lentizellen durchbrechen alsbald die Epidermis und heben sie lippenförmig empor. Abwechselnd mit den Füllzellen erzeugt das Korkkambium in den Lentizellen namentlich zur Herabsetzung ihrer Durchlässigkeit während des Winters Schichten fester verbundener, verkorkter und verholzter Zellen, Zwischenstreifen oder Verschlußschichten, die später (im Frühling) gesprengt werden.
3. Mechanische oder Festigungsgewebe[51]. Ohne eine gewisse Festigkeit könnte die Pflanze ihre Gestalt nicht beibehalten, die meist für ihre Lebenstätigkeit unentbehrlich ist. Bei einzelnen Zellen und bei wachsenden Geweben wird die nötige Festigkeit durch die Zellmembranen, den Turgor (vgl. S. 191) und die Gewebespannung (vgl. S. 248) erzielt. Da indes die Zellhäute dünn sind, Turgor und Gewebespannung aber schon durch jeden stärkeren Wasserverlust aufgehoben werden (Welken der Pflanze), so reicht beides nicht aus, um der Pflanze, namentlich der Landpflanze, auf die Dauer die nötige Festigkeit zu verleihen. So sehen wir denn bei sehr vielen Pflanzen besondere Gewebe aus Zellen mit stark verdickten Membranen, das Sklerenchym und das Kollenchym, mit mechanischen Aufgaben betraut. Diese Gewebe werden auch Stereome genannt.
Welche Ansprüche an die Festigkeit und den Zusammenhang der Teile bei Pflanzen gestellt werden, das leuchtet sofort ein, wenn man sich z. B. einen Roggenhalm vergegenwärtigt, der, aus Hunderttausenden einzelner Zellen zusammengesetzt, bei einer Höhe von 1500 mm kaum 3 mm Durchmesser an seiner Basis mißt. Bis zu 3000 mm erheben sich die schlanken Schäfte des Pfeilrohrs bei einer Grundfläche von nur 15 mm Durchmesser. Die Höhe des Pfeilrohres beträgt das 200fache, die des Roggenhalmes gar das 500fache des Grunddurchmessers. Dabei trägt aber der Roggenhalm an seiner Spitze noch die schwere Last der Ähre, der schlanke Palmstamm die schweren und im Winde wie Segel wirkenden Blätter, die bei Raphia-Arten 15 m Länge und entsprechende Breite erreichen, und zeitweise noch die große Last der Früchte.
Neben seiner Festigkeit verfügt der Pflanzenkörper aber auch über eine Eigenschaft, die wir unseren Bauten nicht entfernt im gleichen Maße geben können; das ist seine außerordentliche Elastizität. Der Roggenhalm weicht der Gewalt des starken Windes aus, indem er seine Spitze bis zum Boden hinabbeugt, schnellt aber in die frühere Lage zurück, wenn die Wirkung des Windes aufhört. Die technischen Leistungen des Pflanzenkörpers sind also einzig in ihrer Art und höchst vollkommen. Von dem festen und zugleich elastischen Baumaterial, das die Pflanze sich herstellt, macht ja auch die Technik aller Völker den ausgedehntesten Gebrauch, indem sie Holz zu Stützen und Trägern, „Bastfasern“ zu Fäden, Tauen und Geweben (z. B. Leinwand) verwendet.
a) Als Sklerenchym bezeichnet man die Festigungsgewebe der ausgewachsenen Pflanzenteile. Sie sind aus Sklerenchymzellen (Steinzellen) oder aus Sklerenchymfasern („Bastfasern“) zusammengesetzt, beides Zellen mit sehr stark verdickten Zellmembranen aus Kohlehydratlamellen, die oft zugleich verholzt sind. Die Sklerenchymzellen oder Steinzellen (Fig. 30) sind mehr oder weniger isodiametrisch, polyëdrisch und haben runde, unverzweigte oder verzweigte Tüpfel in ihren fast stets stark verholzten Wänden. Die Sklerenchymfasern (Fig. 61) dagegen sind schmal spindelförmige, sehr langgestreckte Zellen mit zugespitzten Enden und mit spärlichen schräg aufsteigenden, spaltenförmigen Tüpfeln und haben polygonalen Querschnitt (Fig. 62); ihre Zellwände sind nahezu unverholzt (z. B. beim Lein) oder mehr oder weniger verholzt (z. B. beim Hanf). Die Sklerenchymfasern haben immer eine für Pflanzenzellen sehr bedeutende Länge, durchschnittlich von 1–2 mm. Sie können aber bei manchen Gewächsen noch sehr viel länger werden: beim Lein 20–40 mm, bei der Brennessel bis 77 mm, ja bei der Urticacee Boehmeria bis 220 mm. Solche langen Fasern sind für Gespinste besonders brauchbar. Sie werden erst nach vollendeter Streckung der Pflanzenorgane, vielfach unter Beteiligung von gleitendem Wachstum, fertiggestellt.
Die Sklerenchymzellen und -fasern können einzeln für sich vorkommen, so letztere z. B. in manchen Blättern, wo sie auch nicht selten verzweigt sind. Meist aber sind sie, namentlich die Fasern, ohne Interzellularen zwischen sich zu lassen, zu Sklerenchymsträngen, -bändern und -scheiden gruppenweise recht verschieden, aber so angeordnet, wie es die Ansprüche an die Biegungs-, Zug- oder Druckfestigkeit des ganzen Organs oder seiner Gewebegruppen unter Aufwand von verhältnismäßig wenig Festigungsmaterial erfordern. Druckfestigkeit, z. B. in den Schalen von Nüssen und von Steinen der Steinfrüchte, kommt meist durch Steinzellengewebe, Biegungs- und Zugfestigkeit, z. B. von Stengeln und Wurzeln, dagegen durch Sklerenchymfasergewebe zustande; beide Sorten mechanischer Zellen bedingen außerdem den Widerstand, den viele Organe dem Schneiden und anderen mechanischen Eingriffen entgegensetzen.
Die Festigkeit der einzelnen Zellen beruht auf der Verdickung ihrer Zellmembranen, die manchmal noch durch mineralische Einlagerungen verhärtet sind, die Zerreißungsfestigkeit der Sklerenchymfasergewebe außerdem auf der Verzahnung der Fasern miteinander. Infolge ihrer Faserform und der spindelförmigen Zuspitzung ihrer Enden ist nämlich die Verwachsung benachbarter Fasern eine sehr viel innigere als die anders gestalteter Zellen.
SCHWENDENERs Untersuchungen haben bestimmte Vergleichszahlen für die mechanischen Eigenschaften dieser Zellen ergeben. Danach kommt die Tragfähigkeit der Sklerenchymfasern innerhalb ihrer Elastizitätsgrenze (ihr Tragmodul) im allgemeinen der des besten Schmiedeeisens gleich; sie erreicht bei einzelnen Pflanzen sogar die des Stahls. Dabei ist die Dehnbarkeit gegen 10–15mal größer als die des Schmiedeeisens. Nach Überschreiten der Elastizitätsgrenze tritt alsbald Zerreißen ein, während bei dem Eisen die Festigkeitsgrenze erst bei etwa dreifacher Belastung erreicht wird. Für die Bedürfnisse der Pflanze hat es aber große Bedeutung, daß bei ihr die Elastizitätsgrenze bis nahe an die Festigkeitsgrenze reicht.

Fig. 61. Eine Sklerenchymfaser etwa 100mal vergr. Nach STRASBURGER.
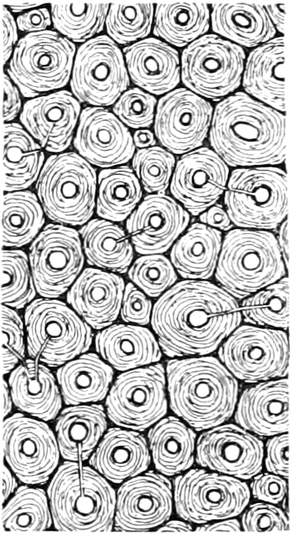
Fig. 62. Querschnitt durch das Sklerenchym im Blatte der Liliacee Phormium tenax. Vergr. 240.
b) Das Kollenchym. Die Elemente des Sklerenchyms sind nicht mehr imstande, zu wachsen; sie können deshalb in Pflanzenteilen, die noch in lebhafter Streckung begriffen sind, keine Verwendung finden. Bedürfen solche Pflanzenteile außer der Festigkeit, welche Zell- und Gewebespannung ihnen verleihen, noch einer besonderen Verstärkung, so wird sie durch Kollenchym erreicht.
Die Kollenchymzelle, die isodiametrisch oder meist sehr langgestreckt (zugespitzt oder mit rechteckigem Umriß Fig. 64) ist, gleicht der Parenchymzelle und enthält wie diese oft Chlorophyll, unterscheidet sich aber von der Parenchymzelle wesentlich dadurch, daß ihre Zellulosemembran ungleich, besonders an den Zellkanten (Kantenkollenchym, Fig. 63) oder an den tangentialen Wänden (Plattenkollenchym) stark verdickt ist. Ferner fehlen in ihrem Plasma, abgesehen von großen Zellsaftvakuolen, leblose Einschlüsse. Auch die Interzellularen fehlen oder sind sehr klein. Das Kollenchym besitzt trotz hohem Wassergehalte infolge der Wandverdickungen seiner Elemente eine ansehnliche Festigkeit gegen Zerreißen. Dabei gibt es dem Wachstum seiner Umgebung dadurch nach, daß es selbst daran noch teilnimmt. Die großen unverdickten Wandflächen, in denen noch rundliche oder spaltenförmige Tüpfel vorhanden sind, ermöglichen zugleich einen schnellen Transport von Baustoffen innerhalb dieser Gewebeart. Auch das Kollenchym ist entsprechend seiner mechanischen Funktion angeordnet.
4. Die Leitgewebe. Je größer der Körper einer Pflanze wird und aus je mehr Zellen er sich zusammensetzt, vor allem aber je mehr Teile er aus dem Wasser oder aus dem Boden in den Luftraum streckt, umso mehr entsteht die Notwendigkeit, Stoffe schnell von einem Organe in ein anderes, etwa von den Wurzeln in die Blätter und umgekehrt, zu schaffen. Die Diffusionsbewegung durch die Querwände selbst langgestreckter Parenchymzellen genügt dazu vielfach nicht, auch wenn die Stoffbewegung durch Ausbildung von Tüpfelkanälen sehr erleichtert wird. So sind besondere, Leitungszwecken dienende Gewebearten, die Leitgewebe, entstanden mit sehr charakteristischen Zellelementen, die in der Hauptleitungsrichtung meist langgestreckt sind, oft vergrößerte Diffusionsflächen besitzen, ja meist zu eigenartigen Leitungskanälen (Fusionen) verschmelzen und stets zu einem zusammenhängenden Systeme verbunden sind, das die ganze Pflanze durchzieht. Bezeichnend für die Leitgewebe ist ferner der Mangel an Interzellularen.
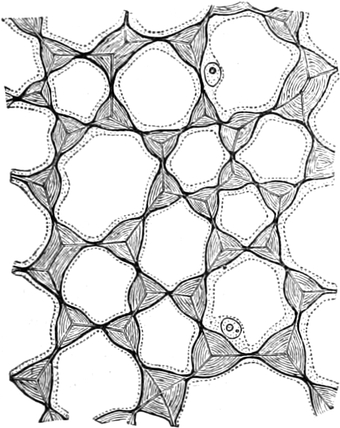
Fig. 63. Querschnitt durch das Kollenchym von Cucurbita Pepo. Vergr. 240.
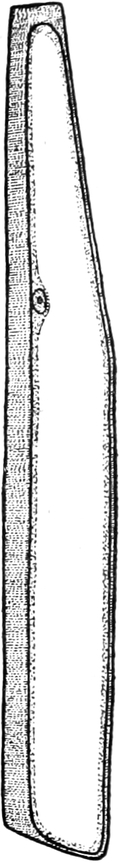
Fig. 64. Eine Kollenchymzelle in Seitenansicht. Vergr. 240.
a) Siebröhren. Durch offene Poren, die dem Transporte von Eiweißstoffen und Kohlehydraten zu dienen scheinen, werden die in Längsreihen angeordneten Glieder der Siebröhren[52] verbunden. Die quergerichteten oder steilen Endwände (manchmal auch die Seitenwände) jedes dieser übrigens langgestreckten, im Querschnitt polygonalen Glieder besitzen nämlich siebartig durchlöcherte Stellen, die von Plasmasträngen ausgefüllt werden. Man nennt diese Stellen Siebplatten (Fig. 65 A, B). Bei vielen Pflanzen, z. B. dem Kürbis (Fig. 65 A), ist die ganze Querwand eines Siebröhrengliedes eine einzige Siebplatte mit verhältnismäßig groben Poren; auf den Längswänden sind dagegen nur eng umgrenzte runde Stellen mit viel feineren Poren als Siebplatten ausgebildet (Fig. 65 C c*), da wo zwei Siebröhren seitlich aneinander grenzen. In anderen Fällen, z. B. auf den alsdann meist steilen Endwänden der Siebröhren, findet man dagegen mehrere solche durch nicht perforierte Membranteile getrennten tüpfelartigen Siebplatten (Fig. 66) mit meist sehr feinen punktförmigen Poren. Die Siebröhrenglieder, deren jedes einer Zelle entspricht, enthalten lebende, dünne plasmatische Wandbeläge mit je einem Zellkern, mit Leukoplasten und oft mit Stärkekörnern und als Zellsaft eine wäßrige alkalische, mehr oder weniger konzentrierte gerinnbare Flüssigkeit, die reich an Eiweißstoffen, oft auch an Kohlehydraten und anorganischen Salzen (Phosphaten) ist (Fig. 65 D). Die Siebröhrenwandungen sind fast stets unverholzt, bestehen aus Zellulose und sind durch den Inhalt elastisch gespannt. Im allgemeinen funktionieren die Siebröhren nur während einer Vegetationsperiode. Bevor sie untätig werden, überziehen sich ihre Siebplatten mit stark lichtbrechenden Kallusplatten (Fig. 65 C), die den Stoffaustausch zwischen den Siebröhrengliedern herabsetzen oder wohl ganz unterbrechen. Soll die Siebröhre in der nächsten Vegetationsperiode nochmals tätig sein, so werden diese Kallusplatten wieder gelöst.
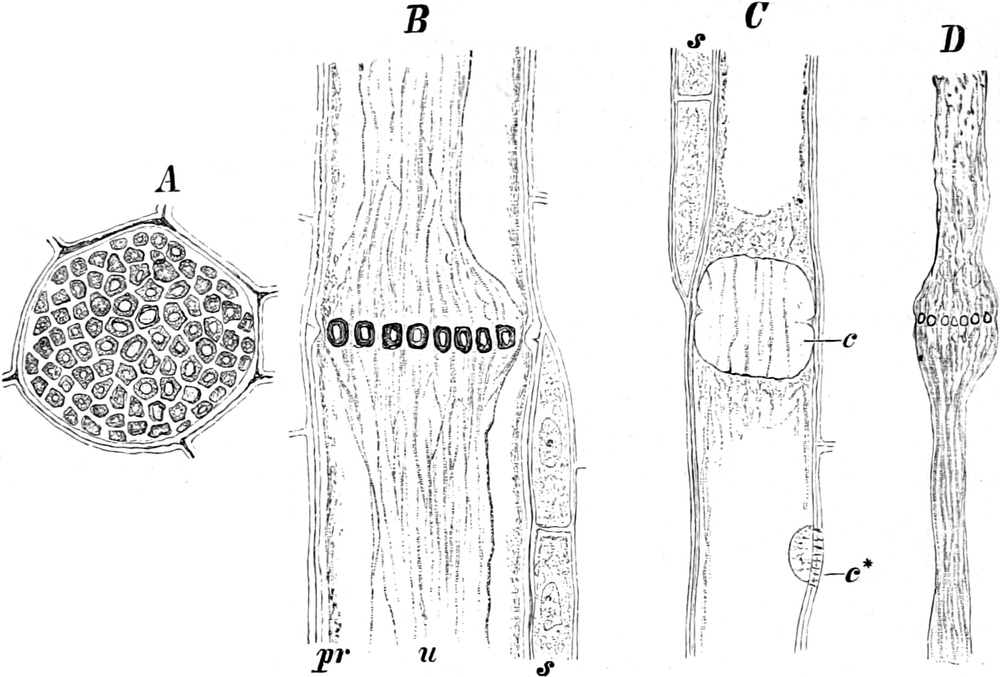
Fig. 65. Teile von Siebröhren des Kürbis (Curcurbita Pepo) in Alkohol gehärtet. A Eine Siebplatte von oben gesehen. B und C Je zwei aufeinanderfolgende Siebröhrenglieder im Längsschnitt; s Geleitzellen, u Schleimstrang, pr plasmatischer Wandbelag, c Kallusplatte, c* kleine seitenständige Siebplatte mit Kallusbelag. D Die Inhaltsmassen von zwei Siebröhrengliedern nach Auflösung der Zellhäute mit Schwefelsäure. Vergr. 540. Nach STRASBURGER.
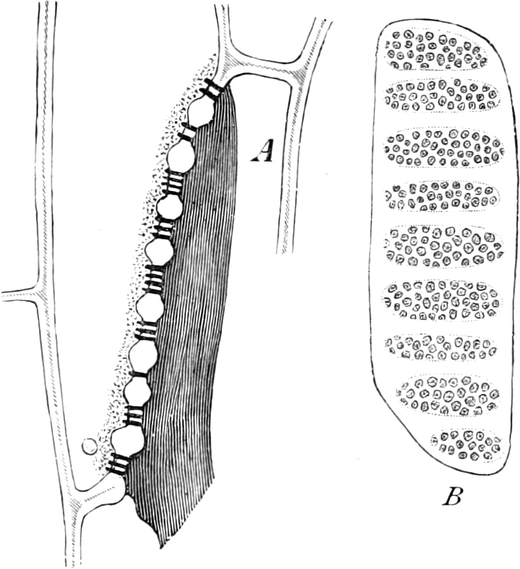
Fig. 66. A Grenze zweier Siebröhrenglieder vom Weinstock (Vitis) mit schräger, längsdurchschnittener Querwand. Vergr. 600. Nach DE BARY. B Eine solche Querwand in Flächenansicht mit den Siebplatten. Von ROTHERT schematisiert nach DE BARY.
Die Kallusplatten bestehen aus Kallose, einem seiner chemischen Zusammensetzung nach noch unbekannten Körper, der sich durch seine Unlöslichkeit in Kupferoxydammoniak, aber seine Löslichkeit in 1%iger kalter Kalilauge auszeichnet. Sie färbt sich in Chlorzinkjodlösung rotbraun, glänzend blau mit Anilinblau und glänzend rot mit Korallin (Rosolsäure). — Kallose überzieht übrigens in dünnen Schichten auch schon die Leisten der Siebplatten zwischen den Poren, solange diese noch offen sind. Diese Schichten werden allmählich dicker, die Poren mehr und mehr verengt und schließlich ganz verstopft.
b) Gefäße. Besondere und zwar tote Zellarten, die meist langgestreckt röhrenförmig sind, rundlichen oder polygonalen Querschnitt haben und in Längsreihen, entsprechend der Hauptleitungsrichtung, angeordnet sind, mit sehr charakteristischen und auffälligen Verdickungen in den meist verholzten Wänden dienen der Leitung, manchmal auch der Speicherung des Wassers in der Pflanze (Gefäße). Die Gefäße enthalten dementsprechend, solange sie tätig sind, Wasser, außerdem aber oft auch begrenzte Mengen Luft. Man teilt sie ein in Tracheïden und Tracheen. Die Tracheïden sind Einzelzellen, die mit eigenartig getüpfelten Zellhäuten aneinander grenzen, meist zugespitzte Enden und in der Regel kleinen Querdurchmesser (Fig. 70 B) besitzen; sie dienen oft zugleich als Festigungszellen, z. B. im Stamme der Nadelhölzer. Die Tracheen dagegen sind verhältnismäßig weite oder enge Membranröhren, die aus Längsreihen vieler Zellen (ihren Gliedern) durch Auflösung der Endwände entstanden sind. Die Endwände werden dabei, wenn sie quer stehen, meist bis auf einen schmalen Rand aufgelöst, der als ringförmige Membranleiste stehen bleibt und verdickt wird (Fig. 67 C bei s, Fig. 69 I bei q und q′); schräge Endwände sind dagegen meist nicht von einem einzigen runden, sondern von mehreren, übereinanderliegenden, spaltenförmigen oder elliptischen Löchern (leiterförmige Perforation, Fig. 69 II; 171 tg) durchbrochen. Einige der Endwände freilich sind nicht durchbrochen, sondern bloß mit Tüpfeln versehen. Infolgedessen haben die Tracheen eine begrenzte Länge.
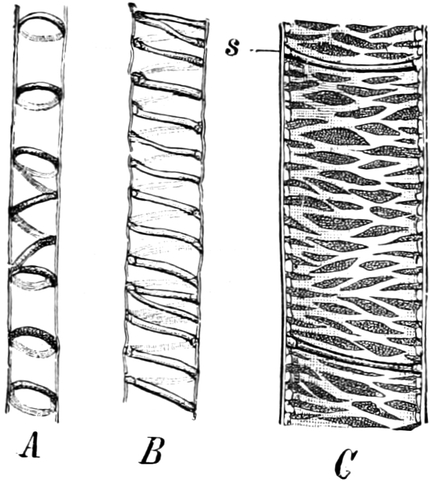
Fig. 67. Teile von Tracheïden und von einer Trachee. A Ring- und Schraubentracheïde. B Schraubentracheïde. C Netztrachee halb aufgeschnitten, bei s eine der beiden durchlöcherten Querwände. Vergr. 240. Nach H. SCHENCK.
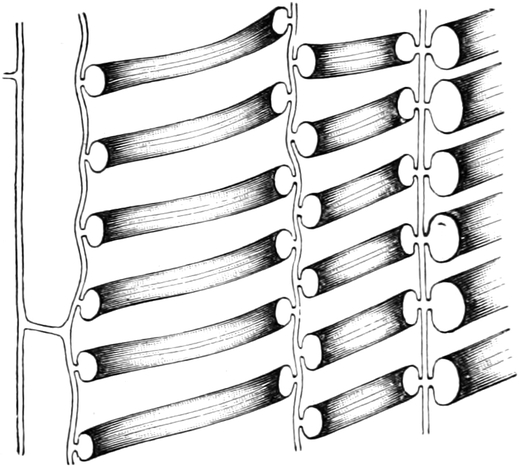
Fig. 68. Teil eines Längsschnittes durch drei Schraubengefäße und eine Reihe von Parenchymzellen des Kürbis (Curcurbita Pepo). Vergr. 560. Nach ROTHERT.
Einzelne Tracheen können zwar, im besonderen bei den kletternden Holzgewächsen, den Lianen, einige Meter lang sein. Auch bei unseren Eichen sind 2 m lange Tracheen noch sehr zahlreich. Im allgemeinen beträgt aber ihre Länge weniger als 1 m, nämlich meist nur gegen 10 cm. Wie die längsten, so sind auch die weitesten Tracheen bei den Kletterpflanzen zu finden; ihr Durchmesser kann hier 0,7 mm erreichen, während er bei unseren Eichen im Mittel 0,25, unserer Linde 0,06 mm beträgt.
Die Bezeichnungsweise der wasserleitenden Elemente ist in der Literatur leider recht verschiedenartig. Meist wird unterschieden zwischen Tracheïden und Tracheen oder Gefäßen. DE BARY dagegen nannte alle Elemente Tracheen und unterschied zwischen Tracheïden und Gefäßen. Am zweckmäßigsten scheint der Vorschlag ROTHERTs, dem wir gefolgt sind, als Sammelbegriff von Gefäßen zu reden und die Gefäße in Tracheïden und Tracheen einzuteilen.
Die Wandverdickungen in vielen Gefäßen sind auf schmale Leisten (Fig. 67 u. 68) in den sonst wenig verdickten Zellwänden beschränkt. Diese Leisten können isolierte Ringe, zusammenhängende Schraubenbänder oder ein Netzwerk mit großen queren Maschen bilden (Fig. 67, 68); man unterscheidet danach zwischen Ring-, Schrauben- und Netztracheïden oder -tracheen. In anderen Gefäßen umfassen die Verdickungen den größeren Teil der Zellmembranen; alsdann bleiben aber zahlreiche kreisförmige, polygonale oder in querer Richtung mehr oder weniger gestreckte elliptische oder spaltenförmige Tüpfel zwischen den verdickten Teilen ausgespart (Fig. 69, 70): Tüpfelgefäße. Stehen an den Seitenwänden quergestreckte Tüpfel regelmäßig in geraden Reihen übereinander, so wird das Gefäß als Treppen- oder Leitergefäß bezeichnet (Fig. 69 II, 70 A). Zwischen sämtlichen Gefäßformen gibt es Übergänge.
Die Tüpfel sind in allen Tüpfelgefäßen zweiseitig oder einseitig behöft (Hoftüpfel). Hoftüpfel heißt ein Tüpfel, dessen Kanal sich nach der Schließhaut hin trichterartig erweitert (Fig. 71 C). Sehr häufig sind die Hoftüpfel in der Flächenansicht kreisförmig; alsdann sieht man in ihrer Mitte einen kleinen konzentrischen Kreis (Fig. 71 A). Der kleinere innere Kreis ist die enge Mündungsstelle des Tüpfelkanals in den Zellraum, der große äußere Kreis (der „Hof“) seine weiteste Stelle, womit er an die Schließhaut grenzt. Zwischen beiden Kreisen überwölben die Verdickungsschichten der Membran die Schließhaut als Tüpfelwandung. Die Schließhäute sind in der Mitte oft zu dem Torus verdickt (Fig. 71 C), vermögen sich nach der einen oder anderen Seite vorzuwölben und mit den Tori die engen Ausgänge der Tüpfel auf einer Seite nach Art von Klappenventilen zu verschließen (Fig. 71 B, t). Die Hoftüpfel lassen infolge ihrer großen Schließhäute sehr rege Flüssigkeits-(Wasser)bewegungen von einem Zellraum in den anderen zu, ohne daß die toten Zellen auf die notwendige Festigkeit ihrer Membranen zu verzichten brauchten, die eben durch die einem Gewölbe ähnliche Tüpfelwandung gewährleistet wird.
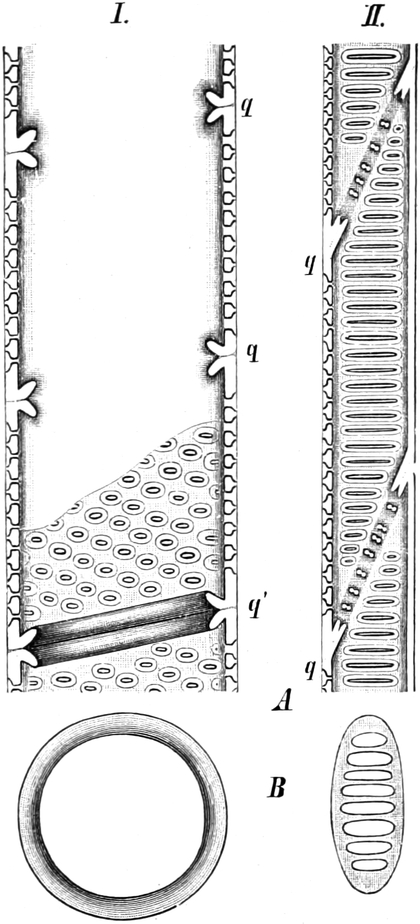
Fig. 69. A Schemata von Tracheen in medianem Längsschnitt. I. Weite Trachee mit kleinen elliptischen Hoftüpfeln und mit einfacher Perforation der Querwände q q. Die Hinterwand der Trachee ist im oberen Teil der Figur weggeschnitten. II. Enge Treppentrachee mit leiterförmiger Perforation der Querwände q. B Die Querwände beider Tracheen, von der Fläche gesehen. Nach ROTHERT.
Die Hoftüpfel sind, wie es die Fig. 71 C zeigt, zweiseitig behöft, wenn sie zwischen zwei wasserleitenden Elementen ausgebildet sind. Sie sind einseitig behöft, wenn sie die Zellwand eines wasserleitenden Elementes durchsetzen, das an eine lebende Zelle grenzt. In diesem Falle erweitert sich der Tüpfelkanal nämlich bloß von dem wasserleitenden Elemente aus nach der Schließhaut hin und hat keinen Torus in der Schließhaut; auf der anderen Seite der Schließhaut dagegen, also in den Wandschichten der lebenden Zelle, ist ein gleich weiter (einfacher) Tüpfelkanal ausgebildet.
Auch die Tüpfel in den Endwänden der Tracheen und Tracheïden sind stets Hoftüpfel. In den Tracheen sind es ihre Schließhäute, die aufgelöst werden (vgl. Fig. 69 A I und II).
Auch in den Ring- und Schraubengefäßen können übrigens die Verdickungsleisten gelegentlich den Wänden von Hoftüpfeln gleichen[53], und zwar dadurch, daß sie T-förmigen Querschnitt haben und mit den verschmälerten Kanten der Gefäßwandung angefügt sind (Fig. 68).
Die dünnen Membranstellen zwischen den Leisten entsprechen alsdann den Schließhäuten von Hoftüpfeln; manchmal sind sie sogar, wenn sie zwei wasserleitende Elemente trennen, wie diese Schließhäute, in ihrer Mitte etwas stärker, als Tori, verdickt. Bei der Anfertigung von Schnitten lösen sich die fast stets verholzten schraubenförmigen Verdickungsbänder oft leicht von den unverdickten (und nicht immer verholzten) Gefäßwandungen ab und werden weithin aus den Gefäßen herausgerissen. Diese Erscheinung findet aber weder in der Befestigungsweise der Bänder noch in der chemischen Beschaffenheit der Schraubengefäßwände eine hinreichende Erklärung.
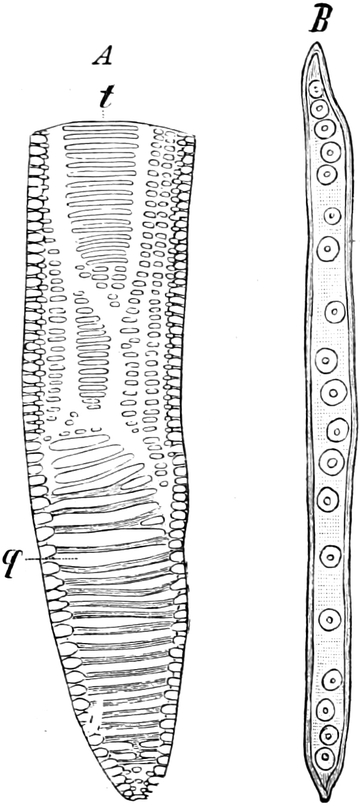
Fig. 70. A Unteres Drittel einer Treppentracheïde aus dem Rhizom des Adlerfarns (Pteridium aquilinum). t Die quergestreckten Tüpfel an den Seitenwänden, q die leiterförmig getüpfelte Endfläche. Vergr. 95. Nach DE BARY. B Eine Tracheïde mit runden Hoftüpfeln. Vergr. 100. Nach STRASBURGER.
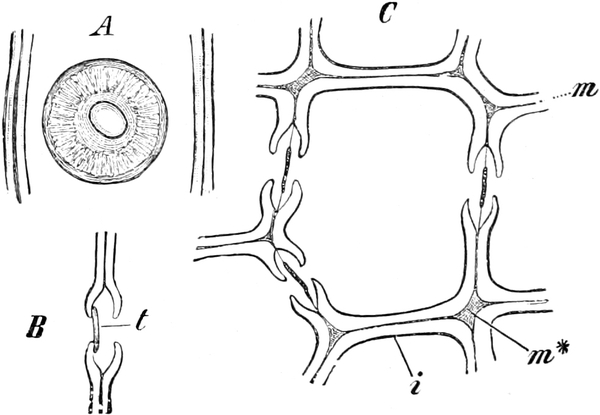
Fig. 71. Tracheïden aus dem Holze der Kiefer (Pinus silvestris). A Radialer Längsschnitt mit Hoftüpfel in Flächenansicht. B Tangentialer Längsschnitt mit Hoftüpfel im Querschnitt, t der Torus. C Querschnitt durch eine Tracheïde, m Mittellamelle, m* ein Zwickel in dieser, i das Grenzhäutchen. Vergr. 540. Nach STRASBURGER.
Nur die mit ring- oder schraubenförmigen Verdickungsleisten versehenen Gefäße sind noch streckungsfähig und dehnbar; daher werden nur solche in wachsenden Pflanzenteilen ausgebildet.
Die Wandverdickungen erhöhen die mechanische Festigkeit der wasserleitenden Elemente, indem sie es verhindern, daß die benachbarten lebenden Zellen sie zusammendrücken. Der lebende Inhalt der Gefäße wird, während die Zellmembranen sich verdicken, immer ärmer; schließlich schwindet er, in den Tracheen nach Durchbrechung der Querwände, ganz.
Leitbündelgewebesystem. Die Siebröhren treten fast nie für sich allein auf, sondern sind meist mit Leitparenchym zu Strängen oder Bündeln (Siebsträngen) verbunden, die die ganze Pflanze durchziehen. Gleiches gilt für die Tracheïden und Tracheen (Gefäßstränge); Tracheïden finden sich freilich auch einzeln oder in kleineren Gruppen nicht selten als Wasserspeicher im Parenchym zerstreut (Speichertracheïden).
Im primären Gewebe verbinden sich Sieb- und Gefäßstränge meist zu gemeinsamen Strängen oder Bündeln, vollständigen Leitbündeln, die meist parallel zur Längsachse eines Organes verlaufen, durch Querzweige zu einem Netzwerk verbunden und so auffällig sind, daß man für dieses Strangsystem den Namen Leitbündelgewebesystem geprägt hat. Darin sind also die Elemente der Wasserleitung mit denen der Leitung organischer Stoffe verbunden, so daß das Wasser und diese Stoffe auf nahe benachbarten Wegen, wenn auch oft in entgegengesetzter Richtung geleitet werden. Dieses Gewebesystem kann primären oder sekundären Ursprungs sein. In jedem vollständigen Leitbündel, das sich durch seine engen Elemente und den Mangel an Interzellularen schon bei schwächster Vergrößerung von dem übrigen weniger dichten Gewebe abhebt, ja manchmal sogar mit bloßem Auge sichtbar ist, z. B. in den durchscheinenden Stengeln von Impatiens parviflora, lassen sich also Gewebestränge zweierlei Art unterscheiden: Gefäßstränge bilden den Gefäßteil oder das Xylem, und Siebstränge bilden den Siebteil oder das Phloëm. Xylem und Phloëm können in den Bündeln verschieden angeordnet sein; infolgedessen sind auch die Querschnittsbilder der Bündel recht verschieden (vgl. S. 85 ff.).
Für das vollständige Leitbündel und seine Teile werden noch andere Namen in der Literatur gebraucht. Statt Leitbündel sagt man auch Gefäßbündel, Fibrovasalbündel oder Mestom, statt Gefäßteil Holzteil, Vasalteil oder Hadrom, statt Siebteil Bastteil, Kribralteil oder Leptom.
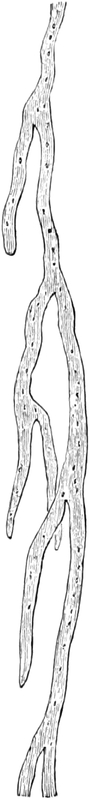
Fig. 72. Stück einer Milchröhre der Asclepiadacee Ceropegia. Vergr. 150. Nach STRASBURGER.
Sieb- oder Gefäßstränge kommen aber nicht selten auch für sich allein vor. Solche Sieb- oder Gefäßstränge kann man als unvollständige Leitbündel bezeichnen. Sie sind besonders im sekundären Dauergewebe weit verbreitet, und zwar Gefäßstränge im Holz, Siebstränge im Bast (vgl. S. 133, 136).
5. Sekretzellen und Sekretgewebe. 1. Einzelzellen. In den verschiedensten Geweben findet man besonders häufig Sekretzellen, einzeln für sich oder oft in längs verlaufenden Reihen (so z. B. bei Liliaceen, Amaryllidaceen, Commelinaceen). Sie sind isodiametrisch oder schlauchförmig (Schläuche) und unterscheiden sich von den übrigen Zellen vornehmlich durch ihren Inhalt. In dem oft stark geschwundenen, nicht selten schließlich abgestorbenen Protoplasten liegen als Endprodukte des Stoffwechsels sehr große Mengen Sekrete verschiedenster Art, die als Schutzstoffe ökologische Bedeutung haben können. Als solche Sekrete sind besonders verbreitet: Schleime, Gummi, ätherische Öle, Harze, Gummiharze, Gerbstoffe, Alkaloide oder Oxalatkristalle (Fig. 22). Die Wandungen dieser Zellen sind oft verkorkt.
Zu den Sekretzellen gehören auch die ungegliederten Milchröhren, die als Sekrete Milchsäfte enthalten. Es sind reich verzweigte Schläuche ohne alle Querwände, Röhren, die eine meist unverdickte, glatte, elastische Zellulosewand (Fig. 72), einen lebenden Wandbelag aus Plasma mit zahlreichen Zellkernen, manchmal auch mit Stärkekörnern (bei vielen Euphorbien von knochenförmiger Gestalt) besitzen[54] und als Zellsaft eine milchige, meist weiße, wäßrige Flüssigkeit enthalten, die an der Luft rasch gerinnt. Der Milchsaft hat ökologische Bedeutung; er dient zum Wundverschluß und als Schutzmittel gegen Tierfraß. Leitfunktion haben die Milchröhren dagegen nicht.
In dem Milchsaft kommen gelöst vor: Gerbstoffe, Glykoside, manchmal giftige Alkaloide und besonders Kalkmalat, ferner bei Ficus Carica und Carica Papaya auch peptonisierende Enzyme; weiter als Tröpfchen in Emulsion: Gummiharze, d. h. Gemenge von Gummi und Harz, Kautschuk (C25H40), Guttapercha, Fett und Wachs; als feste Bestandteile: vielfach Proteïnkörner.
Solche Milchröhren findet man bei vielen Euphorbiaceen (z. B. Euphorbia), Moraceen, Apocynaceen und Asclepiadaceen. Sie gehen aus Zellen hervor, die schon in der Keimpflanze kenntlich sind und mit der ganzen Pflanze weiterwachsen, sich fort und fort verzweigen, in alle ihre Glieder eindringen und so viele Meter lang werden können.
2. Zellfusionen. Mehrere Sekretzellen können auch durch Auflösung der trennenden Querwände zu einem geräumigeren Sekretbehälter verschmelzen. Am auffälligsten ist das der Fall bei den gegliederten Milchröhren oder Milchgefäßen. Sie sehen ganz ähnlich aus und besitzen auch ganz entsprechenden Inhalt wie die ungegliederten Milchröhren, unterscheiden sich von ihnen nur dadurch, daß sie aus Zellverschmelzungen hervorgehen und meist zu einem Netzwerk verbundene Schläuche sind (Fig. 73). Infolgedessen findet man in ihnen manchmal Reste von Querwänden.
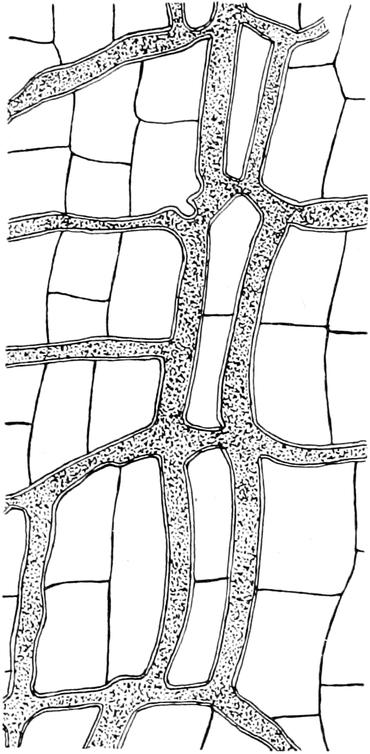
Fig. 73. Tangentialer Längsschnitt aus der Peripherie der Wurzel des Löwenzahns (Taraxacum), die netzförmig verbundenen Milchgefäße zeigend. Vergr. 240.
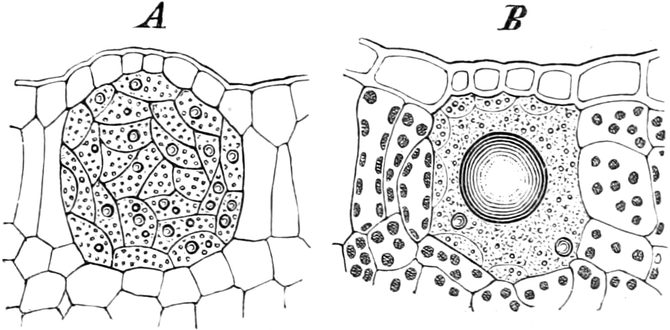
Fig. 74. Lysigener Ölbehälter im Querschnitt des Blattes von Dictamnus Fraxinella. A Jung. B Nach Auflösung der Zellwände fertig ausgebildet. ROTHERT frei nach RAUTER.
Wie die Milchröhren, so sind auch die Milchgefäße auf bestimmte Pflanzenfamilien beschränkt, so auf gewisse Euphorbiaceen (z. B. bei dem wichtigsten Kautschukbaum Hevea), die Papaveraceen mit Papaver und dem durch orangerote Färbung seines Milchsaftes ausgezeichneten Chelidonium, ferner auf die Campanulaceen und die Cichorieen unter den Kompositen, etwa mit den Gattungen Cichorium, Taraxacum, Lactuca, Scorzonera, Hieracium, Tragopogon. Ihre Funktionen entsprechen denen der ungegliederten Milchröhren.
Den Milchgefäßen in vieler Beziehung ähnlich sind die Schleimröhren, die bei vielen Monokotylen vorkommen. Ihr Schleimsaft besteht aus Eiweiß, Stärke, Glykose, Gerbstoffen und anorganischen Stoffen.
3. Lysigene Interzellularräume. Häufig entstehen ferner Sekretbehälter auch lysigen, d. h. durch Auflösung der ganzen Sekretzellen (Fig. 74) (lysigene Sekretbehälter). Sie stellen rundliche Gebilde, unregelmäßige Hohlräume und schlauchförmige Gänge dar. Sie gehen aus Zellgruppen hervor, in denen die Sekrete entstanden sind und deren Wände allmählich aufgelöst wurden. Solchen Ursprung haben unter anderem die mit ätherischem Öl gefüllten Sekretbehälter der Orangen, Zitronen und anderer Rutaceen sowie vieler Myrtaceen.
6. Drüsenzellen und Drüsengewebe. Außer Sekretzellen findet man, ebenfalls einzeln oder auch zu Gruppen vereint, in der Epidermis, im Parenchym oder in anderen Gewebearten oft Drüsenzellen, d. h. Zellen, die Sekrete, also meist Endprodukte des Stoffwechsels, aus ihren Protoplasten durch die Zellwände nach außen, aus dem Pflanzenkörper oder in Interzellularen, ausscheiden. Auch die Drüsenzellen, die immer lebend sind, gleichen den Parenchymzellen, sind aber wie die Meristemzellen meist mit viel Plasma und mit großen Zellkernen ausgestattet. Die ausgeschiedenen Stoffe haben oft eine ökologische Bedeutung. Gruppen von lückenlos verbundenen Drüsenzellen, die eine Zellschicht bilden, nennt man Drüsenepithelien.
Besonders häufig findet man in der Epidermis Drüsenepithelien oder einzelne Drüsenzellen. Sie sind oft von einer porösen Kutikula überzogen, oder eine Kutikula fehlt ganz. Hier kommen auch Drüsenhaare vor, so auch Köpfchenhaare, deren als Köpfchen ausgebildete Endzelle (Fig. 75) die Drüsenzelle ist. Andere solche Haare sind schuppenförmig gestaltet (Fig. 76); auch Drüsenzotten (Fig. 56) kommen vor. Das Sekret besteht sehr oft aus harzigen Stoffen; in diesem Falle tritt es zunächst zwischen der Außenwand der Drüsenzelle und der Kutikula auf, die Kutikula emporhebend und schließlich zersprengend. Ähnliches gilt für andere klebrige Stoffe und Schleim.
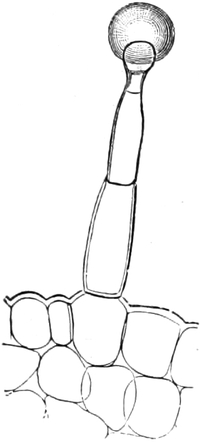
Fig. 75. Drüsenhaar vom Blattstiel der Primula sinensis, oben das Sekret. Vergr. 142. Nach DE BARY.
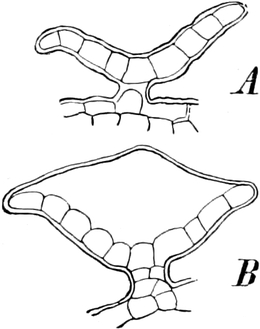
Fig. 76. Gelbe Drüsenschuppen von den weiblichen Blütenständen des Hopfens im senkrechten Durchschnitt. A Vor Beginn der Sekretbildung. B Die Kutikula durch das Sekret emporgehoben, das Sekret durch Alkohol entfernt. Vergr. 142. Nach DE BARY.
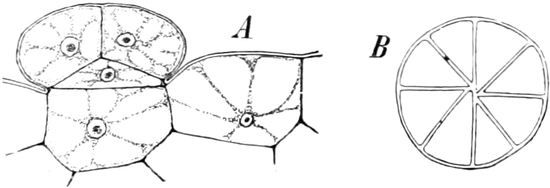
Fig. 77. Sitzende Digestionsdrüse der Blattoberseite von Pinguicula vulgaris. A Im Längsschnitt. B In Aufsicht. ROTHERT frei nach FENNER.
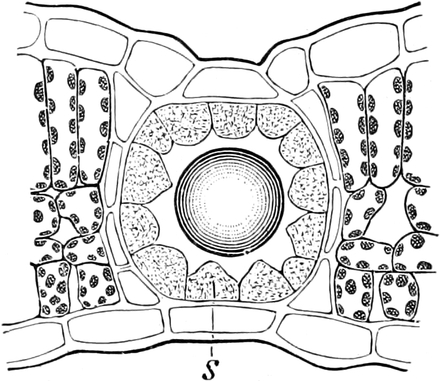
Fig. 78. Schizogener Ölbehälter im Blattquerschnitt von Hypericum perforatum. s Das Drüsenepithel. Nach HABERLANDT.
Nach den Ausscheidungsprodukten, die recht verschiedene ökologische Bedeutung haben können, unterscheidet man unter den epidermalen Drüsen: Schleim-, Öl-, Harz-, Digestions- (Fig. 77), Salzdrüsen, Wasserdrüsen (Hydathoden) und Nektarien[55]. Die letztgenannten scheiden zuckerreiche Sekrete aus, die Insekten anlocken; sie finden sich als Drüsenflächen oder Drüsenhaare vor allem innerhalb der Blüten (nuptiale Nektarien), oder außerhalb (extranuptiale Nektarien, vgl. Fig. 141 n) und haben recht verschiedenen Bau (vgl. auch S. 99).
Die im Parenchym oder in anderem Gewebe eingeschlossenen Drüsenzellen oder Drüsenepithelien grenzen stets an rundliche oder unregelmäßig begrenzte Interzellularräume oder an gang- und röhrenförmige, unverzweigte oder verzweigte Interzellularkanäle, die manchmal die ganze Pflanze als kommunizierende Röhren durchziehen können. Diese Interzellularen, die durch Auseinanderweichen der Drüsenzellen, also schizogen, entstehen, sind es, in die die Sekrete ausgeschieden werden; sie bilden die schizogenen Sekretbehälter (Fig. 78). Ihr Inhalt besteht aus ätherischen Ölen, Harzen, Gummi, oder Schleim; dementsprechend unterscheidet man zwischen Öl-, Harz- (Fig. 133 A, h), Gummi- und Schleimgängen oder -kanälen. Solche Harzkanäle finden sich bei vielen Coniferen, Ölgänge z. B. bei den Umbelliferen, Schleim- und Gummigänge bei den Cycadeen und Araliaceen (wie dem Epheu). Runde oder längliche schizogene Höhlungen (Lücken) mit ätherischen Ölen kommen bei Hypericum-Arten vor (Fig. 78).
Übrigens gibt es auch schizolysigene Sekretbehälter.
Dritter Abschnitt. Organlehre (Organographie)[56].
Die Organismen, die wir zum Pflanzenreiche rechnen, sind sehr verschieden gestaltet und gegliedert. Teils sind sie zeitlebens einzellig, teils sind sie vielzellig. Einzellige wie Vielzellige können sehr einfache und regelmäßige oder unregelmäßige Umrißformen haben und äußerlich ganz ungegliedert sein oder einen durch Auszweigungen mannigfaltigster Art reich und mehr oder weniger symmetrisch gegliederten Körper besitzen.
I. Symmetrieverhältnisse. Die ganze Gestalt eines ungegliederten oder irgendwie gegliederten Organismus und ebenso die Form und die innere Ausbildung seiner Teile wird beherrscht durch die Eigenart der Symmetrieverhältnisse, d. h. durch die mehr oder weniger gesetzmäßige Verteilung der organischen Massen, die das Lebewesen oder seine Organe zusammensetzen. Die Symmetrieverhältnisse stehen wie fast alle Eigenschaften organischer Formen in engster Beziehung zu der Lebensweise des Organismus und zu den Funktionen seiner Organe, vor allem der Wuchsrichtung der Pflanze und ihrer Glieder. Meist entspricht deshalb den äußeren Symmetrieverhältnissen eines Pflanzenteiles auch die Symmetrie seines inneren Baues.
Von wenigen, sehr einfachen Pflanzen abgesehen, deren Symmetrieverhältnisse hier unerörtert bleiben sollen, finden wir am Körper pflanzlicher Organismen und jedem seiner Teile fast stets einen polaren Gegensatz seiner durch die Längsachse verbundenen Körperenden, seiner Spitze und Basis ausgebildet. Ein solcher Unterschied kommt vor sowohl bei frei beweglichen Formen, bei denen die Fortbewegungsrichtung meist durch die polare Ausbildung des Körpers bestimmt wird, als auch bei festgewachsenen Arten, bei denen der Körper mit dem unteren Pole, der Basis, am Substrate festgeheftet ist.
Jeder Schnitt parallel zur Längsachse, gleichgültig ob er diese in sich aufnimmt oder nicht, ist ein Längsschnitt durch den Pflanzenteil; die rechtwinklig zur Längsachse geführten Schnitte sind Querschnitte. Ein polar gebauter Organismus oder Pflanzenteil, der rings um seine Längsachse annähernd gleich gebaut ist, wird als radiär, polysymmetrisch oder aktinomorph bezeichnet (Fig. 529 A). Er läßt sich durch mehrere, in der Längsachse sich schneidende Längsschnitte in jeweils zwei spiegelbildlich ungefähr gleiche Teile zerlegen; er hat also mehrere Symmetrieebenen. An solchen Körpern heißen Längsschnitte radial, wenn sie durch die Längsachse gehen (wie es z. B. bei seinen Symmetrieebenen der Fall ist), tangential, wenn sie senkrecht auf einem Radius stehen und nicht durch die Längsachse hindurch gehen. Sind bloß zwei aufeinander senkrecht stehende Symmetrieebenen vorhanden, die sich ebenfalls in der Längsachse schneiden, so spricht man von bilateralen oder bisymmetrischen Gebilden (Fig. 107). Gibt es schließlich bloß eine einzige Symmetrieebene, so liegt ein dorsiventraler, monosymmetrischer oder zygomorpher Körper vor, bei dem nur die beiden Flanken einander entsprechen, Rücken- und Bauchseite aber verschieden sind (Fig. 529 B); die Symmetrieebene solcher Körper nennt man ihre Medianebene oder Mediane. Pflanzen oder Pflanzenteile, die in der Lotrichtung nach aufwärts oder abwärts (orthotrop) wachsen, sind meist radiär oder wohl auch bilateral symmetrisch; wenn sie dagegen senkrecht oder schräg zur Lotlinie (plagiotrop) wachsen, so sind sie oft dorsiventral. Schließlich gibt es auch ganz asymmetrische organische Gebilde, bei denen sich der Körper überhaupt nicht in spiegelbildliche Hälften teilen läßt. Manche sonst dorsiventrale Gebilde, wie z. B. manche Blätter, werden dadurch asymmetrisch, daß die eine Hälfte sich anders ausbildet als die andere. Das ist z. B. bei den Blättern von Begonia der Fall, weshalb man diese Pflanzen auch „Schiefblätter“ nennt, ferner in geringerem Grade u. a. bei den Blättern der Ulme.
Die Symmetrieverhältnisse sind für das Verständnis der pflanzlichen Gestaltungsverhältnisse von sehr großer Bedeutung. Oft werden die besonderen Symmetrieverhältnisse der Seitenglieder sofort verständlich, wenn man den Aufbau der ganzen Pflanze in Betracht zieht. So sind die asymmetrischen Blätter, z. B. bei den Begonien[57], die Folge der dorsiventralen Symmetrie der ganzen, meist mehr oder weniger plagiotropen Pflanze oder, wie bei der Ulme und vielen anderen Gewächsen, ihrer Zweige.
II. Bedeutung der äußeren Gliederung für den Organismus. Bau und Gliederung zeigen meist enge Beziehungen zu den Lebensbedürfnissen und zur Lebensweise der Einzelformen. Äußere Gliederung ist meist gerade so wie die innere der Ausdruck einer Arbeitsteilung, die zwischen den Teilen einer Zelle oder eines vielzelligen Körpers eingetreten ist. Die äußeren Glieder sind nämlich meist zu Organen mit bestimmten Lebensfunktionen geworden. Der phylogenetische Fortschritt von einfacheren zu reicher gegliederten organischen Formen besteht zum guten Teile in der Zunahme dieser Arbeitsteilung.
III. Hauptgruppen von Organen. Jeder Organismus betätigt sich in doppelter Weise: Er muß sich ernähren, um sich selbst zu behaupten; und er muß sich fortpflanzen, um die Art zu erhalten, da sein Leben begrenzt ist. Diesen beiden fundamentalen Lebensregungen dient der Körper. Nur bei primitiven Pflanzen ist er in gleicher Weise mit seiner ganzen Masse beiden Aufgaben dienstbar; sonst besorgen bestimmte Teile die Ernährungsvorgänge, andere die Fortpflanzung. So finden wir meist eine scharfe Arbeitsteilung zwischen den Vegetationsorganen und den Fortpflanzungsorganen, die wie in ihren Funktionen, so auch in ihrem äußeren und inneren Bau fundamental verschieden sind. Beide Gruppen von Organen müssen wir getrennt betrachten.
I. Vegetationsorgane.
Die höchste Gliederung, die die Pflanze in ihren Vegetationsorganen erfahren hat, ist die Gliederung in Wurzeln, Stengel und Laubblätter. Stengel und Laubblätter faßt man auch als Sproß zusammen. Einen aus Sproß und Wurzeln bestehenden Körper nennen wir Kormus. Die Gewächse solchen Baues bezeichnet man wohl als Kormophyten; dazu gehören die farnähnlichen Gewächse oder Pteridophyten und die aus ihnen hervorgegangenen, noch reicher gegliederten Samenpflanzen.
Die Kormophyten sind phylogenetisch entstanden aus einfacher organisierten Gewächsen, bei denen der Körper noch nicht eine so weitgehende Gliederung erfahren hat: bei denen die Wurzeln und echten Blätter noch fehlen, wenn bei manchen auch blattähnliche Zweige vorkommen können. Solche Gebilde bis herab zu ganz einfachen, völlig ungegliederten Pflanzenkörpern hat man Thalli genannt. Gewächse, die einen Thallus besitzen, kann man als thallöse Pflanzen den Kormophyten gegenüberstellen. Einen Thallus haben die Algen, Pilze, Flechten und alle Moose.
Mit den thallösen Pflanzen darf man die Thallophyten nicht verwechseln. Alle thallösen Pflanzen haben zwar einen Thallus, aber nicht alle sind Thallophyten. Unter diesem Namen faßt die Systematik nur die Algen, Pilze und Flechten zusammen.
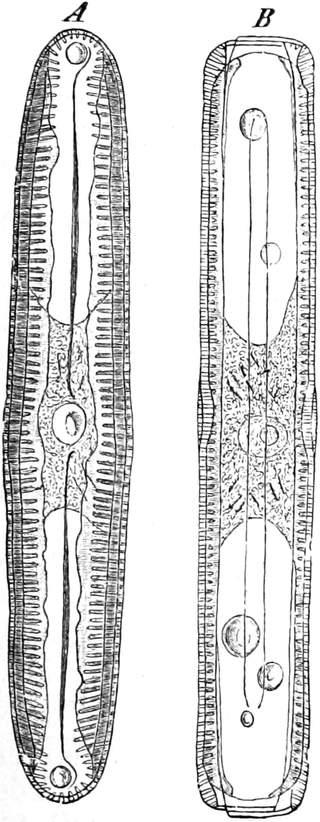
Fig. 79. Die Kieselalge Pinnularia viridis in zwei Ansichten. A Die Schalenansicht, B die Gürtelbandansicht. Vergr. 540. Nach STRASBURGER.
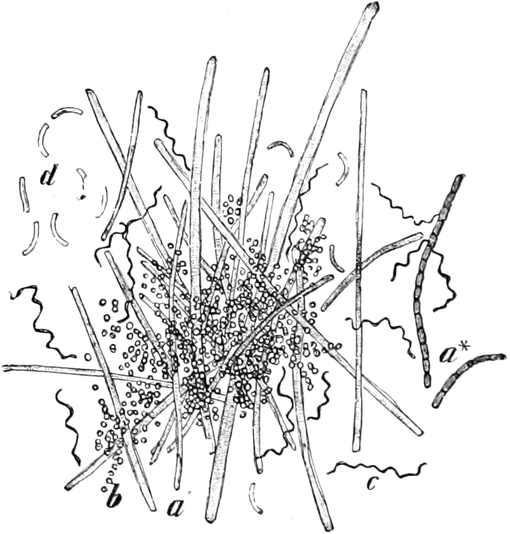
Fig. 80. Bakterien des Zahnschleims. a Leptothrix buccalis, bei a* nach Jodbehandlung, b Mikrokokken, c Spirochaete dentium nach Jodbehandlung, d Spirillum sputigenum. Vergr. 800. Nach STRASBURGER.
A. Der Thallus[58].
a) Algen, Pilze, Flechten. 1. Einfachste (Kugel-)Formen. Äußerlich ganz ungegliedert ist bloß eine Reihe mikroskopisch kleiner einzelliger oder vielzelliger Gewächse. Die einfachste Form, die ein Organismus annehmen kann, ist die Kugel. Aus solchen Kugelzellen bestehen z. B. manche Algen, die an feuchten Mauern grüne Überzüge bilden (Fig. 35), und viele Bakterien (Fig. 80 b), die bei weitem kleinsten Organismen, die wir kennen.
2. Relative Oberflächenvergrößerung. Ausbildung einer Längsachse. Die Kugel hat von allen geometrischen Figuren gleichen Rauminhaltes die kleinste Oberfläche; und zwar ist die Oberfläche der Kugel um so kleiner im Verhältnis zu ihrem Volumen, je größer dieses wird, und umgekehrt (gleiches gilt übrigens auch für alle anders geformten Gebilde). Bei den winzig kleinen Bakterienzellen ist also die Oberfläche im Verhältnis zu ihrem Rauminhalt ganz außerordentlich groß; ja man darf die auffallend geringe Größe dieser Organismen in dieser Hinsicht wohl geradezu als Anpassung an ihre Lebensweise bezeichnen. Alle Abweichungen von der Kugelgestalt sind mit einer mehr oder weniger ausgiebigen relativen Vergrößerung der Oberfläche verbunden. Namentlich wenn das Körpervolumen zunimmt, im Verhältnis dazu seine Oberfläche also sich verringert, wird meist auf diese Weise die Oberfläche des Körpers vergrößert. Alsdann finden wir Zylinder-, Stäbchen-, Faden-, Band- und Scheibenformen, sowie schließlich äußerlich gegliederte, mit Fortsätzen ausgestattete Körper, also zumeist Gebilde, die bereits eine deutliche Längsachse erkennen lassen. Die freie Oberfläche des Körpers nämlich ist bei jeder Pflanze von allergrößter Bedeutung für die Aufnahme der zur Ernährung unbedingt notwendigen flüssigen und gasförmigen Stoffe aus der Außenwelt. So ist eben die Oberflächenvergrößerung das wichtigste Prinzip der Oberflächendifferenzierung.
Von ellipsoidischer Form sind die einzelligen Individuen der Bierhefe (vgl. Fig. 20); scheibenförmig oder zylindrisch sind die Zellen vieler Algen, z. B. vieler Diatomeen-Arten. In dieser Algengruppe gibt es auch spindel-, schiff- (Fig. 79), helm-, fächer-, faden-, band- und kettenförmige Gebilde. Stäbchen- und schraubenförmige Gestalten finden wir auch bei den Bakterien (Fig. 80 a, c, d). Die Bakterienzellen besitzen natürlich auch dann, wenn sie nicht Kugelgestalt haben, eben infolge ihrer außerordentlichen Kleinheit gegenüber ähnlich gestalteten Zellen anderer Organismen eine ungewöhnlich große freie Oberfläche.
Solche Lebewesen können mit Gallerte oder Schleim auf einer Unterlage festsitzen oder auch frei in Flüssigkeiten, vor allem in Wasser, flottieren. Die flottierenden Organismen des Wassers, der Binnengewässer sowohl wie der Meere, bezeichnet man als Plankton im Gegensatze zu den Wasserorganismen, die festgeheftet sind, dem Benthos. Die Planktonflora, die sehr reich an eigenartigen Formen ist, enthält fast lauter solche Gestalten, wie wir eben genannt haben. Sie können mit aktivem Bewegungsvermögen begabt sein (Schwimmer). Der Fortbewegung dienen alsdann in der Regel besondere Organe: sehr häufig fadenförmige kontraktile Geißeln oder Zilien, die Fortsätze des Plasmakörpers sind. Ihr Besitz erlaubt es solchen Planktonten, durch Reizbewegungen die Stellen mit den günstigsten Ernährungsbedingungen aufzusuchen, ungünstige Stellen aber zu fliehen. Andere Planktonorganismen schweben dagegen ohne eigenes Bewegungsvermögen im Wasser (Schweber); viele von ihnen und andere Planktonten besitzen besondere Schwebeeinrichtungen. Die Oberflächen ihrer Körper sind durch lange Stacheln, Leisten, fallschirmartige Platten außerordentlich vergrößert (Fig. 319, 321, 322); dadurch erhöht sich der Reibungswiderstand des Körpers am Wasser bedeutend, und das Sinken wird erschwert[59].
Haben alle diese einfach organisierten Pflanzen starre Körperformen, so gibt es auch niedere Pflanzen, die ständig ihre Gestalt wechseln, also ohne feste Umrisse sind, z. B. die Myxamöben und die Plasmodien der Schleimpilze.
3. Ausbildung des polaren Gegensatzes. Als nächste Stufe der fortschreitenden Gestaltung kann bei Formen mit Längsachse jene gelten, bei der sich ein Unterschied zwischen Basis und Spitze oder Scheitel einstellt. Bei freibeweglichen Formen ist alsdann der eine Pol oft Träger der Fortbewegungsorgane (Geißeln). Bei festgewachsenen dient er meist als Haft- oder Befestigungsorgan (als kreisrunde Haftscheibe oder als krallen- oder fingerförmig verzweigte Haftlappen usw.) der Anheftung, während das Wachstum sich auf eine eng umgrenzte Stelle des Körpers, einen Vegetationspunkt, beschränken kann, nämlich bald auf eine Zone zwischen Basis und Spitze (interkalares Wachstum, interkalarer Vegetationspunkt), bald mehr und mehr auf den Scheitel (apikales oder Spitzenwachstum, apikaler Vegetationspunkt). Ein Keimling der grünen Meeresalge Ulva Lactuca mag für den letzteren Fall als Beispiel dienen (Fig. 81).
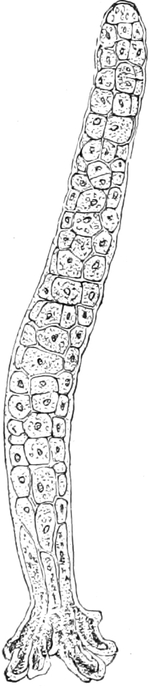
Fig. 81. Keimling von Ulva Lactuca. Oben der Scheitel, unten die Basis. Vergr. 220. Nach STRASBURGER.
4. Abplattung. Bei vielen Algen und Flechten ist der Thallus bandförmig oder scheibenförmig abgeplattet (Fig. 83). Dadurch wird die freie Oberfläche, worauf es der Pflanze ankommt, weiter wesentlich vergrößert. Deshalb darf man diese Ausbildung wohl als eine Anpassung an die Ernährungsverhältnisse dieser Organismen ansehen. Sie bauen sich nämlich ihre organische Substanz aus dem Kohlenstoffe der Kohlensäure auf, die sie zerlegen. Diese Zerlegung und Assimilation aber erfolgt wie bei allen Pflanzen, die Chlorophyll enthalten, nur am Lichte. Soll sie also in größerem Maße stattfinden, so müssen möglichst viele Chlorophyllkörner dem Lichte ausgesetzt werden. Das aber wird eben bei voluminösen Körpern vielfach durch Abflachung erreicht.
5. Ausbildung von Dorsiventralität. Die Mehrzahl der bisher besprochenen Formen ist radiär oder bilateral symmetrisch. Bei manchen, namentlich solchen, die mit ihrem Thallus auf einer Unterlage sich ausbreiten, also plagiotrop wachsen (z. B. bei vielen Flechten), ist der Körper aber auch dorsiventral ausgebildet. Dorsiventrale Symmetrie ist namentlich solchen Formen eigentümlich, deren Oberseite mehr Licht erhält als die Unterseite. Alsdann ist vor allem die obere Seite für die Assimilation eingerichtet.
6. Ausbildung von Verzweigungen. Noch höher organisiert sind Fäden, Bänder und Scheiben, die durch Fortsätze verzweigt sind. So ist die Mehrzahl der Thalli bei Algen, Pilzen und Moosen gestaltet. Durch die Verzweigung wird die freie Oberfläche meist noch weiter bedeutend vergrößert und zugleich eine bessere Raumausnutzung ermöglicht. Es können dadurch schließlich busch-, strauch- und baumförmige Thalli entstehen, bei den Algen vielfach mit Zweigen sehr großer Biegsamkeit und Geschmeidigkeit, die dem bewegten Wasser keinen Widerstand entgegensetzen, sondern in ihm fluten.
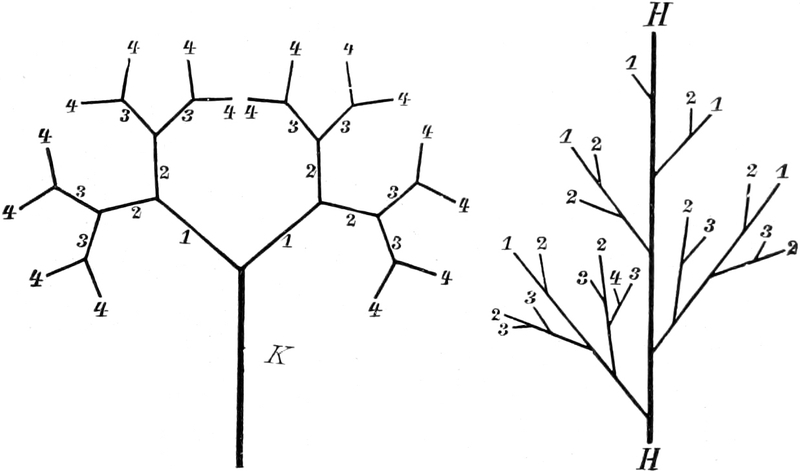
Fig. 82. a Schema der dichotomischen, b der seitlichen, razemösen Verzweigung. K Keimlingsachse, H Hauptachse, 1, 2, 3, 4 Tochterachsen 1., 2., 3., 4. Ordnung.
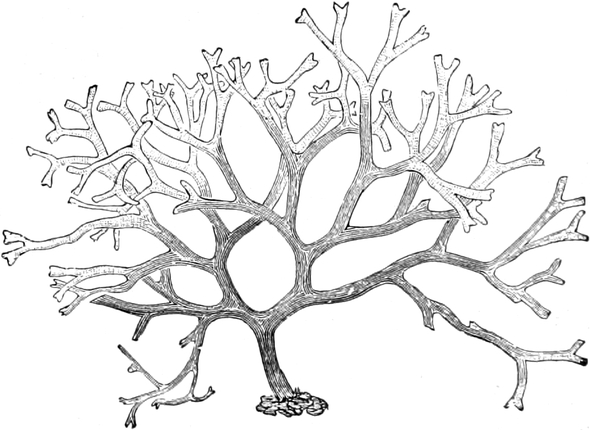
Fig. 83. Dictyota dichotoma (braune Meeresalge). 2⁄3 nat. Gr. Nach SCHENCK.
Bei der Verzweigung kann sich der Scheitel der Keimlingsachse selbst in zwei neue, gleichmäßig weiterwachsende Glieder teilen, gabeln (dichotome Verzweigung), so bei dem sich fortdauernd gabelnden, da durch fächerförmigen Thallus der braunen Meeresalge Dictyota dichotoma (Fig. 83 und das Schema Fig. 82 a). Bei anderen verzweigten Formen wachsen dagegen durch Neubildung von Vegetationspunkten Seitenzweige hervor, oft mit gesetzmäßiger Anordnung (seitliche Verzweigung). An höher organisierten Formen schränkt sich auch bei dieser Art der Verzweigung die Bildung solcher Vegetationspunkte immer mehr und mehr auf den Scheitel des Thallus ein; die dem Scheitel nächsten, jüngsten Seitenzweige sind alsdann die kürzesten. Eine solche scheitelwärts fortschreitende, akropetale Anlage neuer Seitenglieder ist bereits bei der grünen Fadenalge Cladophora deutlich (Fig. 84, vgl. auch Fig. 89). Bei der einfachsten Ausbildung der seitlichen Verzweigung geht eine einheitliche Hauptachse, die an der Spitze immer weiter wächst, ein Monopodium, durch das ganze Verzweigungssystem. Sie ist die Mutterachse für eine größere Zahl nacheinander meist ringsum entstandener und schwächer wachsender Seitenachsen, die sich in gleicher Weise verzweigen können. Man nennt diese Verzweigung die razemöse Verzweigung (vgl. das Schema Fig. 82 b).
Alle Seiten- (oder Tochter-)achsen, die unmittelbar an der Keimlingsachse entstehen, nennt man 1. Ordnung; solche, die an Tochterachsen erster Ordnung durch Verzweigung entstehen, 2. Ordnung und so fort (vgl. Fig. 82). Jede Achse, an der eine Tochterachse irgendeiner Ordnung entsteht, wird mit Bezug auf diese Auszweigung Mutterachse des Tochtergliedes genannt. Die Seitenachsen können unbegrenztes Wachstum haben, Langtriebe sein, oder es sind Kurztriebe mit begrenztem Wachstum.
An Achsen mit interkalaren Vegetationspunkten entstehen die Seitenzweige entweder akropetal oder basipetal.
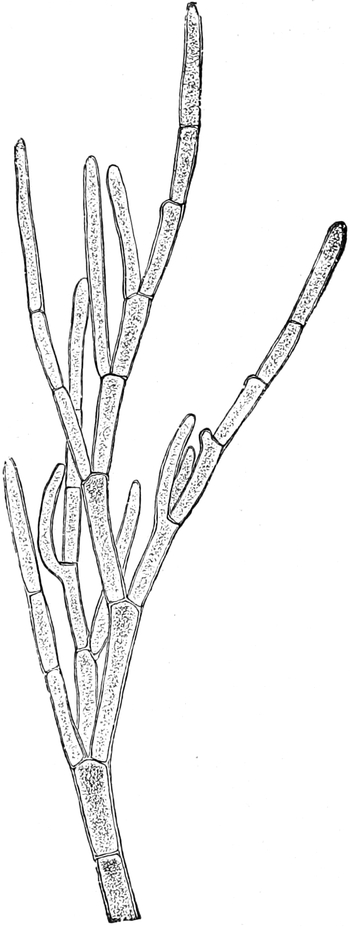
Fig. 84. Stück einer Cladophora glomerata (Süßwasseralge). Vergr. 48. Nach SCHENCK.
Fig. 85. Unechte Verzweigung bei Spaltalgen. A Plectonema Wollei: nur das obere Ende des zerbrochenen Fadenstückes wächst als Ast aus. B Pl. mirabile: beide Enden wachsen weiter. OLTMANNS nach KIRCHNER u. BORNET.
Übrigens kommt bei Thallophyten auch die zymöse Verzweigung vor, die wir später beim Kormus näher kennen lernen werden.
Diese Verzweigungsarten nennt man echte. Im Gegensatz dazu findet sich bei einigen niederen, fadenförmigen Algen und Bakterien unechte Verzweigung. Sie kommt dadurch zustande, daß der Faden in zwei Stücke zerbricht, die aber durch eine Gallertscheide auch ferner zusammengehalten werden, und daß jedes durch den Bruch entstandene neue Fadenende zu einer fadenförmigen Zellreihe auswachsen kann (Fig. 85). Nicht von Verzweigung, sondern von Zerteilung spricht man dagegen, wenn ein unverzweigter Thallus nachträglich in eine Anzahl Lappen zerteilt wird, wie es z. B. bei dem bandartigen Thallus von Laminaria (Fig. 352) der Fall ist.
Bei den Pilzen, die keine Kohlensäure assimilieren, sondern sich von organischen Stoffen ernähren, hat der Thallus dementsprechend ein besonderes Aussehen. Man nennt ihn Myzelium. Er besteht meist nur aus sehr dünnen in reichverzweigten, farblosen, zylindrischen Fäden (Fig. 86 und Fig. 6), den Hyphen, die das Substrat, z. B. den Waldhumus, allseitig durchziehen, so daß sie mit außerordentlich großer Oberfläche die nötigen Nährstoffe aufnehmen können. Schmarotzerpilze treiben meist Ausstülpungen von Hyphen als Saugfortsätze (Haustorien) in die lebenden Zellen der Wirtspflanzen, sofern sie nicht in den Zellen leben, sondern etwa mit ihren Hyphen das Interzellularsystem durchziehen (Fig. 87).
Fig. 86. Teil eines Myzeliums von dem Schimmelpilz Penicillium. Vergr. ca. 35.
Fig. 87. Haustorien (haust) von Peronospora parasitica in Parenchymzellen von Capsella. hy Interzellulare Hyphe. Vergr. 240.
Fig. 88. Thallus der Rotalge Delesseria sanguinea. 1⁄2 nat. Größe. Nach SCHENCK.
7. Arbeitsteilung zwischen den Thalluszweigen. Am reichsten gegliedert ist der Thallus in einigen Abteilungen der Schlauchalgen (Siphoneen), der braunen und der roten Meeresalgen (Phaeophyceen und Rhodophyceen). Die äußere Gliederung mancher solcher mit Haftscheiben, Haftlappen oder verzweigten Strängen befestigten Formen, die zum Teil sehr groß werden können (der Thallus der Braunalge Macrocystis wird über 45 m lang), erinnert auffallend an die des Sprosses der Kormophyten, so z. B. bei der roten Meeresalge Delesseria sanguinea (Fig. 88): an zylindrischen, verzweigten Thallusästen sitzen Seitenzweige, die blattähnlich gestaltet sind. Der Thallus hat bei vielen solchen Formen außer der Ausbildung eines Haftorgans (einer Haptere) und der Zweige eine weitere Arbeitsteilung zwischen seinen Gliedern eintreten lassen: einige Zweige sind zylindrisch und dienen dazu, das Wachstum und die Verzweigung des Thallus als Langtriebe fortzusetzen und die übrigen Triebe zu tragen. Die letzteren dagegen sind zu blattartigen Assimilationsorganen (Assimilatoren) mit begrenztem Wachstum, zu Kurztrieben, geworden. Ja, diese Kurztriebe zeigen manchmal unter sich nochmals eine Arbeitsteilung. Solche Formen sind morphologisch von höchstem Interesse, weil sie uns zeigen, wie die Blätter der Kormophyten aus Kurztrieben entstanden sein könnten.
Die Ausbildung blattähnlicher Kurztriebe an den Körpern von thallösen Pflanzen ist offenbar selbständig in jeder der genannten Reihen entstanden, nämlich da, wo Thallusstücke zu besonderen Assimilationsorganen wurden. Alle diese Gebilde nahmen annähernd gleiche Form, eben die Blattform, an. Die blattartigen Triebe der Siphoneen und Braunalgen sind, mit anderen Worten, denen der Rotalgen nicht homolog, sondern nur analog.
8. Innerer Bau der Thalli. Alle diese Thalli, mögen sie gegliedert oder ungegliedert sein, können aus einem einzigen Protoplasten bestehen (z. B. Schlauchalgen: Caulerpa, Fig. 348) oder, wie es meist der Fall ist, aus vielen Zellen sich zusammensetzen. Bestehen sie aus vielen Zellen, so sind diese entweder in einer Reihe zu einem Zellfaden (Fig. 84), in einer Fläche oder zu einem Zellkörper angeordnet. Die einfachsten mehrzelligen Thalli setzen sich aus lauter gleichförmigen und in gleicher Weise teilungsfähigen Zellen zusammen. Sobald ein Vegetationspunkt sich ausbildet, tritt aber eine Sonderung ein zwischen embryonalen, teilungsfähigen, und Dauerzellen. Die äußersten Spitzen der apikalen Vegetationspunkte werden bei vielzelligen Thalli fast stets von einer einzigen Zelle, der Scheitelzelle, eingenommen, die bei manchen Formen nur wenig von den anderen Zellen abweicht, so bei der Fadenalge Cladophora glomerata (Fig. 84). An den vielzelligen Langtrieben der büschelig verzweigten braunen Meeresalge Cladostephus verticillatus fallen die großen kuppenförmig gestalteten Scheitelzellen aber sofort auf (Fig. 89).
Jede solche an der Spitze fortwachsende Scheitelzelle teilt sich durch quere, einander parallele Wände, die von ihrem unteren Ende scheibenförmige Segmente abschneiden. Diese teilen sich in gesetzmäßiger Weise weiter zunächst durch Längswände, hierauf durch Querwände in eine größere Anzahl zunächst noch embryonaler Zellen. Aus bestimmten Randzellen der Segmente wachsen, spitzenwärts fortschreitend, die Seitenzweige (meist als Kurztriebe) hervor, die das Aussehen der Pflanze bestimmen (Fig. 89). Auch flache bandartige Körper können eine ähnlich gestaltete, nur entsprechend abgeflachte Scheitelzelle besitzen, so die in Fig. 90 dargestellte braune Meeresalge Dictyota dichotoma[60]. Von ihr (Fig. 90 A) werden durch grundwärts vorgewölbte Querwände flache Segmente abgeschnitten, die sich weiterhin durch Längswände teilen. Gelegentlich wird die Scheitelzelle aber auch durch eine Längswand in zwei nebeneinander liegende gleichgroße Scheitelzellen geteilt (B, a, a), deren jede einen Seitenzweig bildet. Dadurch kommen die Gabelungen des Körpers zustande.
Die Dauerzellen des Thallus sind fast immer, selbst bei den am reichsten gegliederten Thalli, nur Parenchymzellen. Ist der Thallus ein vielzelliger Körper, so kann wohl eine Sonderung eintreten in peripher gelegenes chlorophyllreiches Assimilationsparenchym, in Speicherparenchym, das an Reservestoffen reich und farblos ist, und in Leitparenchym aus langgestreckten Zellen.
Eine Veranlassung zur Ausbildung einer typischen Epidermis fehlt bei den vielzelligen Algen, da sie im Wasser eines Schutzes gegen Austrocknung nicht bedürfen und durch Schleimüberzüge vor zu starkem Wasserverlust bewahrt bleiben, wenn sie bei der Ebbe etwa an die Luft gelangen. Doch besitzen die Algen an ihren Oberflächenzellen schon eine äußere Zellmembranlamelle, die sich mit Chlorzinkjod braun färbt. Für genügende Festigung des Thallus, besonders bei den in der Brandung wachsenden Arten, wird durch starke Verdickung der Wände in den äußeren Zellagen, unter Umständen auch durch Inkrustationen mit kohlensaurem Kalk gesorgt. Beim Blasentang (Fucus vesiculosus) sind zudem besondere mechanische, durch ihre Dickwandigkeit, große Dehnbarkeit und Elastizität ausgezeichnete Zellen vorhanden. Den relativ höchsten Grad innerer Differenzierung zeigen die ebenfalls zu den braunen Algen gehörenden Laminarien. In den stammartigen Achsen, die bei diesen Pflanzen sehr dick werden, läßt sich Rinde, Zentralkörper und ein lockeres Mark unterscheiden. Die Rinde enthält vielfach Schleimgänge, das Mark sogar Züge siebröhrenartiger Zellen, die vielleicht der Stoffleitung dienen; solche Zellen kommen übrigens auch bei manchen Rhodophyceen vor. Die Laminarienachsen wachsen durch fortgesetzte Teilung der Rindenzellschicht in die Dicke. Die Produkte dieser Teilungstätigkeit bilden eine Art sekundäres Gewebe mit konzentrischen Zonen, die an Jahresringe der Samenpflanzen erinnern.
Die Thalli der Flechten kommen durch Verflechtung von Pilzhyphen zustande und können parenchymatische Struktur annehmen. Bei vielen Arten werden die peripherischen Schichten durch sehr dichte Verfilzung der Hyphen und sehr starke Verdickung der Hyphenwände zu schützenden Rinden über den assimilierenden Algen.
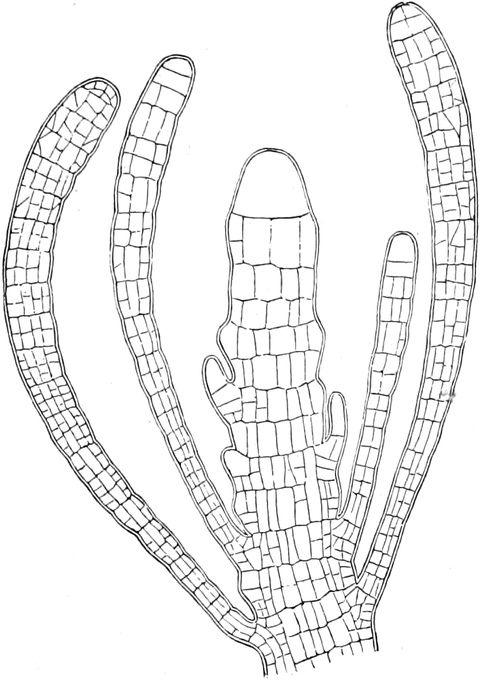
Fig. 89. Endtrieb von Cladostephus verticillatus. Vergr. 30. Nach N. PRINGSHEIM.
Fig. 90. Der Vegetationspunkt von Dictyota dichotoma und seine Gabelung. a Die Scheitelzellen. Nach E. DE WILDEMAN. Vergr. ca. 500.
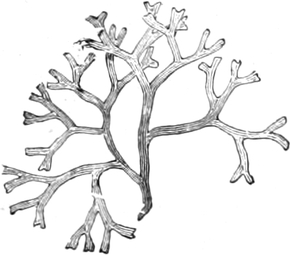
Fig. 91. Riccia fluitans. Nat. Gr. Nach SCHENCK.
Fig. 92. Blasia pusilla. r Rhizoide. Vergr. 2. Nach SCHENCK.
b) Moose[61]. Im äußeren und inneren Bau der Moospflanzen (Bryophyten) kommt wie bei den Algen wieder zum Ausdruck, daß sie Kohlensäure assimilieren. Es gibt zunächst Lebermoosarten, deren Körper bandartig ist, sich gabelig verzweigt und auffällig dem Körper von Algen, wie Dictyota (Fig. 83), gleicht, so das Lebermoos Riccia fluitans (Fig. 91). Bei dem Lebermoos Blasia pusilla (Fig. 92) ist der bandartige Körper, der, wie viele andere thallöse Moose, eine Mittelrippe besitzt, seitlich gelappt, als ob blattartige Gebilde sich zu sondern begännen. Die am reichsten gegliederten Lebermoose, wie Plagiochila asplenioides (Fig. 93), und alle Laubmoose tragen solche an einem zylindrischen, verzweigten Stengel als besondere Assimilationsorgane. Seitenzweige sitzen an den Mutterachsen unter den Blättern. Auch diese dorsiventralen, bilateralen oder radiären sproßähnlichen Körper, die bei den Laubmoosen oft Polster bilden, sind den Sprossen der höheren Pflanzen nur analog. Man faßt sie wohl am besten als hoch differenzierte Thalli auf. Den Moosen, die im Gegensatze zu den meisten Algen in der Regel Luftorganismen sind, fehlen nämlich noch die Wurzeln; sie befestigen sich am Boden nur durch Rhizoiden: einzellige, an ihrer Basis mit einer Querwand abgegrenzte Haare oder verzweigte Zellfäden, die den Körper auch mit Wasser versorgen. Viele Formen können aber noch mit der ganzen Oberfläche ihrer Vegetationsorgane Wasser aufnehmen.
Liegt der Thallus der Unterlage auf, so ist er wie bei entsprechend lebenden Flechten meist dorsiventral ausgebildet und zeigt bei vielen Lebermoosen oft nur an seiner dem Lichte ausgesetzten Oberseite reicheren Chlorophyllgehalt (Fig. 95). Die Rhizoiden entspringen alsdann ausschließlich der Unterseite.
Auch bei den Moosen, die immer vielzellig sind, wird die Spitze des stets apikalen Vegetationspunktes oft von einer einzigen Scheitelzelle eingenommen.
Fig. 93. Plagiochila asplenioides mit jalousieähnlich übereinander greifenden Blättern. Nat. Gr. Nach SCHENCK.
Fig. 94. Schema des Vegetationspunktes von Metzgeria furcata im Augenblick der Verzweigung. Von der Rückenfläche gesehen. a Die Scheitelzelle der Mutterachse, b des Tochterzweiges. Vergr. ca. 370. Nach KNY.
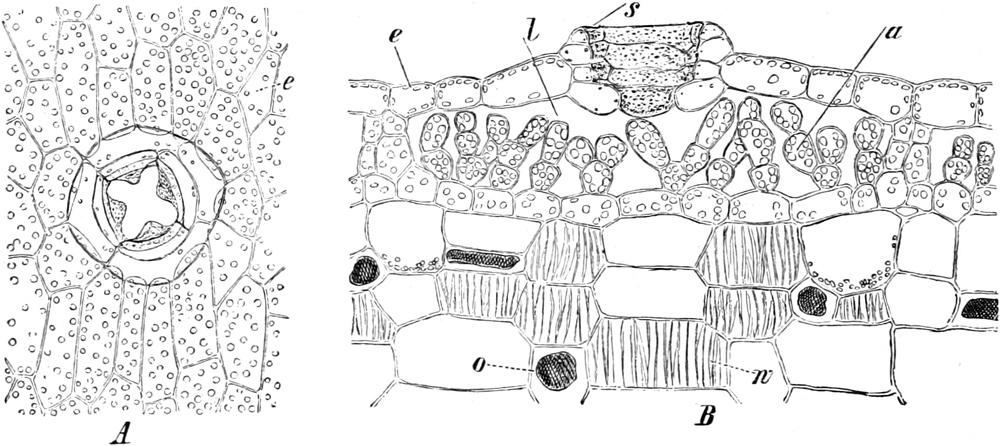
Fig. 95. Oberflächenansicht und Querschnitt des Thallus der Marchantia polymorpha. In A eine Atemöffnung von oben, in B im Querschnitt, e Epidermis, s Randzellen der Atemöffnung, l Luftkammer, a Assimilationszellen, o Ölkörper, w Wassergewebe. Vergr. 240. Nach STRASBURGER und KOERNICKE.
Diese Zelle hat bei bandartigen Lebermoosen, wie Metzgeria und Aneura, ebenso schon bei ähnlich gestalteten Algen, keilförmige Gestalt (Fig. 94) und ist meist zweischneidig, seltener vierschneidig. Die zweischneidige gibt durch aufeinanderfolgende, abwechselnd nach rechts und links geneigte und schräg aufeinander stehende Wände nach zwei Seiten hin Segmente ab, die durch weitere Teilungen den Pflanzenkörper aufbauen; die vierschneidige gibt dagegen auch noch nach oben und unten Segmente ab. Die scheinbar rein gabelige Verzweigung der Lebermoose mit solchen Vegetationspunkten ist auf die frühzeitige Anlage neuer Scheitelzellen aus der randständigen Hälfte junger Segmente (Fig. 94 bei b) zurückzuführen. Bei den aufrecht wachsenden, radiär gebauten Thalli der Laubmoose hat die Scheitelzelle die Gestalt einer dreiflächig zugespitzten Pyramide. Man kann sie dreischneidig nennen. Auch die Blattanlagen der Laubmoose wachsen zuerst mit einer Scheitelzelle, und zwar mit einer zweischneidigen, zeigen also Spitzenwachstum; später wachsen sie interkalar.
Die Dauergewebe sind wesentlich vollkommener als bei den Algen gesondert. Das ist durch das Landleben bedingt, das andere Lebensbedingungen für die Moose als z. B. für die Algen brachte. Zur Abgrenzung einer Epidermis kommt es gleichwohl auch bei den Moosen nur ausnahmsweise, wenn auch die oberirdischen Teile von einer Art Kutikula überzogen sind. Doch setzt sich am Thallus der Marchantien eine äußerste Zellschicht von dem nächst inneren Gewebe deutlich ab. Sie ist von Öffnungen (Fig. 95) durchbrochen, die als Atemöffnungen bezeichnet werden und gleich den Spaltöffnungen der höheren Gewächse Luftspalten sind. Auch haarähnliche, Schleim absondernde Bildungen in Form von Papillen oder blattähnlichen Schuppen sind bei den Moosen weit verbreitet.
Typische Spaltöffnungsapparate mit zwei Schließzellen, die eine Spalte umschließen, findet man aber, wie GOEBEL[61] gezeigt hat, beachtenswerterweise im Thallus der Lebermoosgattung Anthoceros; freilich sind die Spaltöffnungen hier keine Luft-, sondern Schleimspalten.
Ein eigenartiger kapillarer Apparat im Dienste der Wasserversorgung ist bei den Torfmoosen (Sphagnaceen) ausgebildet. Die Rinde der Stämmchen besteht aus drei bis vier Schichten inhaltsleerer Zellen, die begierig Wasser aufsaugen, weil ihre ring- und schraubenförmig verdickten Längs- und Querwände mit runden Löchern versehen sind. In den Blättern liegen solche Zellen einzeln in den Maschen eines einschichtigen Netzes aus langgestreckten, lebenden, chlorophyllhaltigen Zellen.
Manche Lebermoose verfügen auch schon über besondere, der Stoffleitung dienende Stränge aus langgestreckten Zellen, die ihren Körper, bei bandartigen Formen in der Mittelrippe, durchziehen. Gegen das umgebende Gewebe deutlich abgegrenzt treten uns die Leitstränge aber erst bei den Laubmoosen entgegen.
Einen relativ einfach gebauten Leitstrang (l) dieser Art im Stämmchen von Mnium undulatum führt im Querschnitt die Fig. 96 vor. Am vollkommensten ist er in den Stämmchen der Polytrichaceen ausgebildet. Dort verläuft ein zentraler Strang aus langgestreckten, dünnwandigen und plasmaleeren, der Wasserleitung dienenden, aus dickwandigen, der Festigung dienenden Zellen und aus gestreckten Zellen, die Eiweiß und Kohlehydrate enthalten. Auch die einschichtige Blattspreite besitzt oft einen mehrschichtigen Mittelnerv, der einen Leitstrang der geschilderten Art enthalten kann. Dieser setzt sich dann in das Gewebe des Stengels hinein bis zu einem Leitstrang fort. Ferner kommen bei einigen Laubmoosen auch mechanische Zellen vor, die langgestreckt und zugespitzt sind und völlig Sklerenchymfasern gleichen.
Fig. 96. Querschnitt durch das Stämmchen, von Mnium undulatum. l Leitstrang, c Rinde, e die äußerste Zellschicht der letzteren, f Blattflügel, r Rhizoiden. Vergr. 90. Nach STRASBURGER.
c) Gametophyt der Kormophyten[61]. Auch in den Entwicklungsgang der Kormophyten, für die die Ausbildung des Kormus bezeichnend ist, ist ein thallöser Vegetationskörper eingeschaltet: Bei ihnen nämlich wechseln regelmäßig zwei Generationen von Vegetationskörpern miteinander ab, von denen nur die eine, die Sporenpflanze (Sporophyt), als Kormus, die andere aber, die Geschlechtspflanze (Gametophyt), als meist sehr einfach gegliederter und gebauter Thallus ausgebildet ist (Prothallium). Diese Generation lebt bei den Farnpflanzen meist selbständig als ein grünes, mit in der Regel einzelligen Rhizoiden am Boden befestigtes, flaches Gebilde (Fig. 97), das nur einige Zentimeter lang wird und einem kleinen Lebermoosthallus gleicht, aber auch aus verzweigten Zellfäden bestehen kann.
Fig. 97. Aspidium filix mas. Prothallium von der Unterseite. rh Rhizoiden. Vergr. ca. 8. Nach SCHENCK.
B. Der Kormus[62].
Die Vegetationsorgane des Sporophyten der Farnpflanzen (Pteridophyten) und der Samenpflanzen, die wir Kormus nennen wollen, gliedern sich, wie schon gesagt, noch viel weiter als die Thalli, nämlich in Sprosse und Wurzeln, die Sprosse in Sproßachsen und Blätter. Stengel, Blätter und Wurzeln sind die Grundformen des Kormus. Der Kormus zeigt in seinem äußeren und inneren Bau augenscheinliche Anpassungen an das Landleben.
Ebenso wie bei sehr vielen Thalli wird beim Kormus die Oberfläche durch Verzweigungen fast stets bedeutend vergrößert. Die Sproßachse bildet Seitensprosse (Seiten-, Tochterzweige), die Wurzel Seitenwurzeln (Neben-, Tochterwurzeln). Durch die Verzweigung, die bei vielen Gewächsen schon früh an der Keimpflanze beginnt; entsteht ein Sproß- und ein Wurzelsystem.
Den Ausdruck Kormus gebraucht man meist als gleichbedeutend mit Sproß und versteht darunter einen beblätterten Stengel ohne die Wurzeln. Auch den beblätterten Moosen schreibt man dann vielfach einen Sproß oder Kormus zu. Diese Auffassung stammt aus einer Zeit, wo man den Entwicklungsgang der Moose noch nicht genau kannte. Wir haben jetzt Grund zu der Annahme, daß der „Sproß“ der Moose mit den Sprossen der Farn- und Samenpflanzen nicht homolog ist. Also ist es zweckmäßiger, bei den Moosen, wie bei den „beblätterten“ Algen, noch nicht von Sproß oder Kormus zu sprechen. Es steht wohl nichts im Wege, den Begriff Kormus weiter zu fassen als den Begriff Sproß und mit diesem Ausdruck die in Sproß und Wurzeln gegliederten Vegetationsorgane der Kormophyten zu bezeichnen. Übrigens gibt es Übergänge zwischen Wurzeln und Sprossen (z. B. die Wurzelträger von Selaginella), wie auch zwischen Blättern und Sprossen (z. B. bei Utricularia).
1. Bau des typischen Kormus.
Wir wollen zunächst solche Kormi betrachten, denen wir typischen Bau zusprechen können. Die Besonderheiten der Grundformen treten nur in typischer Ausbildung, wie wir sie etwa bei unseren Bäumen oder vor allem bei vielen einheimischen Kräutern finden, deutlich zutage. Die Grundorgane können nämlich mancherlei Umbildungen erfahren, die so weit gehen können, daß ihre Unterschiede sich in extremen Fällen mehr oder weniger verwischen.
a) Der Sproß[63].
Der Sproß, der bei Landpflanzen ganz in der Luft oder teilweise in der Luft (als Luftsproß), teilweise in der Erde (als Erdsproß, Fig. 143) lebt, letzteres bei sehr vielen ausdauernden krautigen Gewächsen (vgl. Fig. 125, 143), besteht aus dem Stengel, den man auch Sproßachse nennt, und aus den Blättern, die am meist grünen Luftsprosse hauptsächlich als grüne Laubblätter (Laubsproß), an den farblosen (weißen) Erdsprossen (Wurzelstöcken oder Rhizomen) aber als blasse Schuppen ausgebildet sind. Die Sproßachse ist der Träger der Blätter, sorgt für die Vergrößerung des Sproßsystems: für die Verlängerung des Stengels, für die Neubildung von Blättern und von Seitenzweigen, stellt die Verbindung der Blätter mit den Wurzeln her und dient der Stoffleitung zwischen diesen Organen. Die Sproßachse der meisten Erdsprosse dient ferner noch der Speicherung von Reservestoffen. Die Laubblätter sind wie die blattähnlichen Kurztriebe der thallösen Pflanzen die Assimilationsorgane und zugleich die Transpirationsorgane der Kormophyten. Diesen Funktionen entspricht der äußere und innere Bau der Laubblätter und des Stengels.
α) Der Vegetationspunkt. Der Sproß zeigt Scheitelwachstum mittels eines apikalen Vegetationspunktes, der sich an der äußersten Spitze, dem Scheitel des Stengels, befindet. Da der Vegetationspunkt gewöhnlich klein, dem bloßen Auge kaum sichtbar ist, so bekommt man ihn erst zu Gesicht, wenn man Längsschnitte durch den Sproßscheitel bei Lupenvergrößerung betrachtet (Fig. 98). Man sieht alsdann, daß er flach (Fig. 99) oder vorgewölbt (Fig. 98 v), manchmal auch steil kegelförmig ist (Vegetationskegel Fig. 100, 102), und daß an seiner Oberfläche, exogen, seitlich oder unterhalb seiner Spitze Höcker oder Wülste (f) dicht gedrängt in großer Zahl vorspringen: die Blattanlagen und zwischen ihnen die Anlagen der Seitenzweige (g). Die Blattanlagen entstehen in akropetaler Reihenfolge, sind daher um so größer, je weiter sie vom Scheitel entfernt sind. Ihre Gestalt wird auf Querschnitten durch den Vegetationspunkt besonders deutlich (Fig. 99).
Fig. 98. Sproßscheitel einer Samenpflanze. Bei v Vegetationspunkt, f Blattanlagen, g Seitenzweiganlagen. Vergr. 40. Nach STRASBURGER.
Fig. 99. Scheitelansicht eines Sproßvegetationspunktes von Evonymus japonica. Vergr. 12. Nach STRASBURGER.
Der Vegetationspunkt und die ganz jugendlichen Blattanlagen, die sich immer nur aus den embryonalen Teilen des Scheitels bilden, bestehen aus embryonalem Gewebe. Bei den meisten Farnen und den Schachtelhalmen liegt an der Spitze des Vegetationspunktes eine Scheitelzelle (Fig. 100 t). Sie ist dreischneidig, hat also die Gestalt einer dreiseitigen Pyramide (eines Tetraëders) mit vorgewölbter Grundfläche als Außenseite.
Die Scheitelzelle (Fig. 100 t und 101 A) an den Hauptsprossen des Ackerschachtelhalmes (Equisetum arvense) kann als Beispiel dienen. Sie erscheint, vom Scheitel aus gesehen (Fig. 101 A), als gleichseitiges Dreieck, in dem neue Scheidewände nacheinander nach drei Seiten, parallel zu jeder der Seitenwände (p), angelegt werden. Jedes Segment (S′, S″) wird durch Scheidewände (m) weiter zerlegt. Bei den Farnpflanzen mit Scheitelzellen beginnen auch die Blattanlagen (f, f′, f″) meist noch ihre Entwicklung mit einer solchen, und zwar mit einer zweischneidigen (f). Weiterhin büßen sie aber die Scheitelzelle meist ein und vollenden ihre Ausbildung durch „Randwachstum“ mittels vieler gleichwertiger zweischneidiger Randzellen. Ein solches Randwachstum findet sich z. B. bei den Blattanlagen von Equisetum. Auch die Anlagen der Seitenknospen (g) bilden sich aus einer Zelle, die zur Scheitelzelle der Anlage wird.
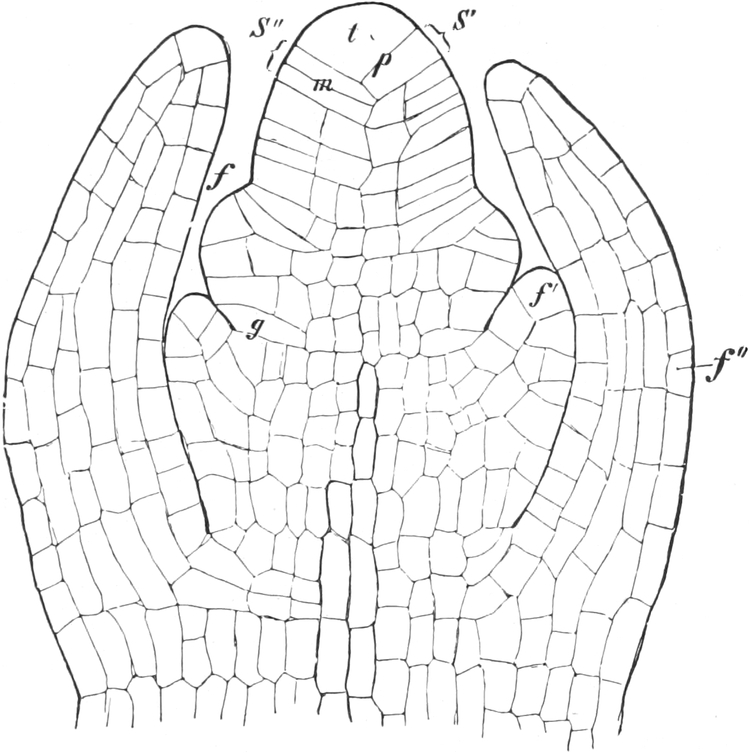
Fig. 100. Medianer Längsschnitt durch den Sproßvegetationspunkt des Schachtelhalms Equisetum arvense. Die Erklärung der Buchstaben im Text. Vergr. 240. Nach STRASBURGER.
Fig. 101. A Scheitelansicht des Vegetationskegels von Equisetum arvense. B Optischer Durchschnitt desselben Vegetationskegels unterhalb der Scheitelzelle. l Seitenwände der Segmente. Die Erklärung der übrigen Buchstaben im Text. Vergr. 240. Nach STRASBURGER.
Fig. 102. Medianer Längsschnitt durch den Vegetationskegel von Hippuris vulgaris (Tannenwedel). d Dermatogen, pr Periblem, pl Plerom, f Blattanlagen. Vergr. 240. Nach STRASBURGER.
Bei den Bärlappgewächsen (Lycopodiaceen) unter den Pteridophyten und bei den Phanerogamen gibt es keine solche Scheitelzelle am Vegetationspunkte. Hier treten an die Stelle der Scheitelzelle mehrere gleichwertige embryonale Zellen, die oft regelmäßig in schalenförmigen Schichten angeordnet sind (Fig. 102).
Die äußerste Zellschicht, die den Vegetationspunkt deckt, als einfache Zellschicht auch die jungen Blattanlagen überzieht und sich im Gegensatze zu den anderen Schichten meist nur durch antikline Wände teilt, heißt Dermatogen (d), weil sie meist ausschließlich die Epidermis der Pflanze liefert; die Zellen, mit denen der zentrale Gewebestrang des Stengels, der Zentralzylinder, im Vegetationspunkt endet, heißen Plerom (pl), die zwischen beiden gelegenen Zellschichten Periblem (pr). Plerom und Periblem lassen sich aber oft nicht unterscheiden. An solchen Vegetationspunkten ohne Scheitelzellen entstehen die Blätter und die Seitenzweige als vielzellige Höcker (Fig. 102). Ihre Anlage pflegt durch örtliche Vermehrung der äußersten Periblemschichten eingeleitet zu werden, während das Dermatogen sich auch hier nur rechtwinklig zur Oberfläche teilt. An den Anlagen der Blätter beteiligt sich außer dem Dermatogen nur das Periblem, an den Anlagen der Seitenzweige auch noch das Plerom[64].
Da auch für diese Vegetationspunkte die Regel der rechtwinkligen Schneidung der jungen Zellwände gilt, so bilden die Zellhäute in ihrer Gesamtheit auf Längsschnitten durch die Spitzen mancher kegelförmiger Vegetationspunkte auffallend symmetrische Figuren: die Periklinen sowohl wie die Antiklinen je eine Schar von Parabeln mit gemeinsamem Brennpunkte (Fig. 268). Die Elemente der einen Schar sind entgegengesetzt gerichtet wie die der anderen und schneiden diese annähernd rechtwinklig (SACHS). Auf Querschnitten durch solche Scheitel bilden die Periklinen aber konzentrische Kreise.
Knospe. Auf die Entwicklungsvorgänge, wodurch am Scheitel des Sprosses aus embryonalem Gewebe neue Glieder angelegt werden, folgt deren Größenzunahme, äußere und innere Ausbildung. Dieses Wachstum pflegt meist mit einer ausgiebigen Streckung der Blattanlagen zu beginnen. Dabei eilen die Blattanlagen also in ihrem Wachstum dem Wachstume der Stengelspitze voraus, und zwar wachsen ihre Unterseiten besonders stark. Infolgedessen schließen die älteren über dem Vegetationspunkt domartig zusammen (Fig. 98) und decken die jüngeren. Auf diese Weise bilden die größeren und älteren Blattanlagen einen sehr wirksamen Schutz des zarten Vegetationspunktes und der jüngsten Blattanlagen gegen Austrocknung, indem sie mit dem Vegetationspunkte eine Knospe bilden. Die Knospe ist also nichts anderes als das jugendliche, noch nicht fertig entwickelte Ende eines Sprosses.
Knospenlage und Knospendeckung. Wie Querschnitte durch Knospen lehren, fügen sich die Laubblattanlagen in verschiedener Weise den engen Raumverhältnissen in der Knospe: Knospenlage (Vernation). Sie können flach ausgebreitet oder auch der Länge nach zusammengelegt, gefaltet, gerollt (Fig. 103 l) oder zerknittert sein. Andererseits sieht man die aufeinanderfolgenden Blattanlagen entweder mit ihren Rändern sich nicht erreichen oder nur berühren oder, was gewöhnlicher ist, mit ihnen übereinander greifen (Fig. 103 k): Knospendeckung (Ästivation). Sie heißt im ersten Falle offen (aperte Ä.), im zweiten klappig (valvate Ä.), im dritten deckend oder dachziegelig (imbrikate Ä) (Fig. 103 k). Wenn alle Blätter einer Knospe mit dem einen Rande das nächste Blatt decken, an dem anderen Rande vom vorhergehenden Blatte gedeckt werden oder umgekehrt, so heißt die Knospendeckung gedreht (kontorte Ä.).
Fig. 103. Querschnitt durch eine Laubknospe von Populus nigra. Die Knospenschuppen k zeigen dachziegelige Deckung, die Laubblätter l haben eingerollte Knospenlage; zu jedem Laubblatt gehören zwei Nebenblätter ss. Vergr. 15. Nach STRASBURGER.
β) Die Sproßachse. A. Äußerer Bau. Der Stengel wächst erst in einiger Entfernung vom Vegetationspunkte durch Streckung ausgiebig in die Länge. Zugleich lösen sich hier die jugendlichen Blätter von der Knospe. Bezeichnend für den Stengel, namentlich der Luftsprosse, ist, daß dieses Streckungswachstum nicht auf ein kurzes Stengelstück dicht hinter der Knospe beschränkt bleibt, sondern auch noch in Stengelstücken stattfindet, die viele Zentimeter (bis über 50 cm) von der Knospe entfernt sind. Freilich ist es in den aufeinanderfolgenden Stengelzonen nicht gleich stark. Es kann überhaupt so gering sein, daß die Blätter des Sprosses auch im fertigen Zustande aneinanderstoßen, ohne freie Stammteile zwischen sich zu lassen. Meist aber ist es so stark und zugleich so verschieden verteilt, daß die Ansatzstellen der Blätter von nackten Stengelstücken getrennt werden (Fig. 115). Die zwischen den Befestigungsstellen der Blätter dabei sich ausbildenden, zylindrischen Stengelstücke nennt man Stammglieder, Stengelglieder oder Internodien, die Stengelzonen dagegen, an denen die Blätter befestigt sind, Knoten, Nodi. Das Streckungswachstum des Stengels ist in den Knoten viel geringer als in den Internodien und in diesen oft auf schmale Zonen, z. B. auf die Basis der Internodien, beschränkt, so bei den Gräsern (interkalares Wachstum); infolgedessen gibt es alsdann nicht mehr eine einheitliche Streckungszone im Stengel, sondern deren mehrere, die von ausgewachsenen Stengelstücken getrennt werden. Die Knoten können angeschwollen sein (siehe Labiaten).
Bei den Luftsprossen sind die Internodien meist dünn, bei den Erdsprossen dagegen oft sehr dick.
Die Länge der aufeinanderfolgenden Internodien an einer Achse (z. B. einem Jahrestrieb) zeigt oft eine bestimmte Gesetzmäßigkeit. Am häufigsten nehmen an der Hauptachse die Längen der Internodien in aufsteigender Richtung zunächst zu und dann wieder ab.
Blattstellung[65]. Besonders bezeichnend für die Sprosse ist die Blattstellung, d. h. die Verteilung ihrer Blätter. Sie kann recht verschieden sein. An einem Knoten können ein bis mehrere Blätter entspringen. Sind mehrere an einem Knoten vorhanden, so bilden sie einen Wirtel oder Quirl; sie sind die Glieder des Wirtels. In diesem Falle spricht man von wirteliger oder quirlständiger Blattstellung. Ist an jedem Knoten bloß ein Blatt ausgebildet, so liegt eine wechselständige Blattstellung vor.
Fig. 104. Querschnitt durch eine Laubknospe der Konifere Tsuga canadensis, dicht über dem Sproßscheitel geführt, 5⁄13 Divergenz. Vergr. etwa 20. Nach HOFMEISTER.
Fig. 105. Schema der 2⁄5-Stellung. Die Blätter ihrer genetischen Aufeinanderfolge nach mit Zahlen versehen. Nach STRASBURGER.
Untersucht man an aufrechten Sprossen mit allseitig ausgebreiteten Blättern die Verteilung der Blätter, so findet man auffällige, sehr beachtenswerte und eigenartige Gesetzmäßigkeiten. Unmittelbar fällt die Regelmäßigkeit der Blattstellungen an Scheitelansichten von Vegetationspunkten auf (Fig. 99, 104). Man sieht daran, daß die jüngsten Anlagen in gesetzmäßiger Weise unter Ausnutzung des vorhandenen Raumes sich den älteren anschließen. Am deutlichsten aber treten die Stellungsverhältnisse der Blätter hervor, wenn man einen schematischen Grundriß davon entwirft. Zu dem Zwecke zeichnet man, wie bei einem Gebäudegrundriß die Teile des Gebäudes, so die Lage der Blätter am Stengel auf eine zur Stengelachse rechtwinklige Ebene ein, indem man die Blätter durch die schematisierten Querschnittsfiguren ihrer Spreiten andeutet. Die Stengelachse denkt man sich kegelförmig; so wird es möglich, Organe, die senkrecht über tieferen stehen, innerhalb der unteren aufzuzeichnen. Solche Grundrisse von Blattstellungen nennt man Diagramme (Fig. 105). In ihnen ist das Zentrum der Stengelvegetationspunkt; die dem Zentrum nächsten Blätter sind die jüngsten und zugleich obersten Blattanlagen, die nach außen folgenden die jeweils im Alter nach unten folgenden Blätter. Zweckmäßig deutet man jeden Knoten durch einen Kreis an; auf die größeren dieser konzentrischen Kreise trägt man die älteren, auf die kleineren die jüngeren Blätter ein, mehrere Blätter an jedem Knoten natürlich auf die Peripherie eines Kreises. Übrigens bilden solche Diagramme oft ähnliche Figuren wie Querschnitte durch die Stengelknospe in der Nähe des Vegetationspunktes, die man bei Vergrößerung betrachtet (Fig. 99, 104).
An radiären aufrechten Sprossen werden die Blätter möglichst gleichmäßig rings um den Stengel verteilt. Durch diese Gesetzmäßigkeit wird erreicht, daß die ausgewachsenen Blätter sich nur wenig beschatten, also das Licht möglichst ausnutzen können. Diese Verteilung ist so gleichmäßig, daß der Winkel, den die Medianen am Stengel aufeinanderfolgender und in diesem Sinne benachbarter Blätter miteinander einschließen (z. B. in Fig. 105, Blatt 1 und 2, 2 und 3 usw.), überall oben und unten am Stengel in der Regel der gleiche ist. Man nennt ihn Divergenzwinkel oder, wenn man ihn in Bruchteilen des Stengelumfanges ausdrückt, Divergenz. Er ist bei verschiedenen Arten verschieden.
Fig. 106. Diagramm der dekussierten Blattstellung. Die punkt. Linien sind die Orthostichen. Nach STRASBURGER verändert.
Fig. 107. Diagramm der zweizeiligen Blattstellung. Die punkt. Linien sind die Orthostichen. Nach STRASBURGER verändert.
Bei wirteliger Blattstellung entspricht der Divergenzwinkel der Blätter eines Wirtels (Fig. 106), dem Kreisumfange dividiert durch die Anzahl der Wirtelblätter, die in der Regel bei allen Wirteln konstant ist. Die Blätter der aufeinanderfolgenden Wirtel stehen nicht übereinander, wechseln vielmehr von Wirtel zu Wirtel miteinander so ab, daß die Glieder des nächst höheren Wirtels in die Mitten der Lücken zwischen den Gliedern des nächst tieferen Wirtels fallen (Fig. 99, 106); man sagt, die Blätter aufeinanderfolgender Wirtel wechseln ab, alternieren. Folge dieses regelmäßigen Wechsels und der Gleichheit der Divergenzwinkel in allen Wirteln ist, daß sämtliche Blätter an einem Stengel mit Quirlstellung in Längsreihen angeordnet sind, deren Zahl doppelt so groß ist wie die Zahl der Blätter eines Wirtels (Fig. 106). Diese Längs- oder Geradzeilen heißen Orthostichen. Verhältnismäßig häufig ist bei Wirtelstellungen die Ausbildung zweigliedriger Quirle (Fig. 99, 106). Bei dieser Blattstellung, die man dekussiert nennt, ist der Divergenzwinkel 180° (die Divergenz also 1⁄2), und gibt es vier Orthostichen. Bei dreigliedrigen Wirteln ist der Divergenzwinkel 120° (die Divergenz 1⁄3), bestehen sechs Orthostichen usw.
Fig. 108. Halbschematische Ansicht des Fichtenzapfens von unten. Schuppen in 8⁄21-Stellung. I–VIII System gleichartig im Sinne des Uhrzeigers den Zapfen umlaufender Parastichen, 1–5 System entgegengerichtet den Zapfen umlaufender Parastichen. Im übrigen vgl. den Text.
Bei wechselständigen Blattstellungen kann die Divergenz, auf dem kürzesten Wege gemessen, 1⁄2, 1⁄3, aber auch z. B. 2⁄5, 3⁄8, 5⁄13 sein. Das Diagramm Fig. 107 führt uns die 1⁄2-Stellung, Fig. 148 die 1⁄3-, Fig. 105 die 2⁄5-, Fig. 104 die 5⁄13-Stellung vor. Auch bei wechselständigen Blattstellungen müssen die Blätter infolge der Gleichheit der Divergenzwinkel in Längszeilen, Orthostichen, am Stengel angeordnet sein: bei 1⁄3-Stellung fällt augenscheinlich Blatt 4 senkrecht über Blatt 1 (Blatt 5 über 2, 6 über 3, 7 über 1 usw.); bei 2⁄5-Stellung (Fig. 105) fällt Blatt 6 über Blatt 1, 7 über 2, 8 über 3 usw. Denkt man sich die Ansatzstellen der am Stengel aufeinanderfolgenden Blätter auf dem kürzesten Wege des Stengelumfanges durch eine Linie verbunden (also in Fig. 105 von Blatt 1 über 2, 3, 4, 5 usw.), so erhält man eine den Stengel umlaufende Schraubenlinie, die als Grundspirale bezeichnet wird. Deshalb nennt man die wechselständigen Blattstellungen wohl auch Schrauben- oder Spiralstellungen. Jeder Abschnitt der Grundspirale, den man von Blatt zu Blatt fortschreitend durchlaufen muß, um von einem Blatte zu dem ersten senkrecht darüberstehenden zu gelangen (in Fig. 105 z. B. von 1 bis 6, oder 3 bis 8), heißt Zyklus der Grundspirale. Bei 1⁄3-Stellung besteht der Zyklus aus drei Blättern; man muß einmal den Stengelumfang durchlaufen, um den Zyklus zurückzulegen. Bei 2⁄5-Stellung (wie in Fig. 105) besteht der Zyklus immer aus fünf Blättern; man muß zweimal den Stengelumfang umkreisen. Der Zähler des Bruches einer Divergenz gibt also stets an, wie oft ein Zyklus die Sproßachse umkreist; der Nenner dagegen, wie viele Blätter der Zyklus enthält, infolgedessen auch, wie viele Orthostichen es gibt und welches Blatt als nächst höheres in der Orthostiche über einem irgendwie bezeichneten steht. Bei 5⁄13-Stellung z. B. muß man fünfmal die Sproßachse umkreisen, um das nächst höhere Blatt zu erreichen, gibt es 13 Orthostichen, steht über Blatt 3 Blatt 16 (3 + 13), über Blatt 8 Blatt 21 (8 + 13). Da der Nenner des Bruches stets die Anzahl der Orthostichen angibt, so nennt man die 1⁄2-Stellung auch die zweizeilige, die 1⁄3-Stellung die dreizeilige usw. Stehen die Blätter am Stengel so gedrängt, daß sie sich berühren, so fallen nicht die Orthostichen, sondern mehr oder weniger steil aufsteigende Schraubenlinien auf, die als Schrägzeilen oder Parastichen bezeichnet werden. Sie entstehen durch die Berührung derjenigen Blätter, deren seitlicher Abstand voneinander an der Sproßachse am kleinsten ist. Sehr deutlich sieht man die Schrägzeilen z. B. am Fichtenzapfen, wovon in Fig. 108 eine etwas schematisierte Ansicht von unten gegeben ist. Die Parastichen sind in dieser Grundansicht Schraubenlinien. Mehrere Systeme untereinander gleichsinnig verlaufender Parastichen treten deutlich hervor: eines (mit ungebrochenen Linien I-VIII bezeichnet) umläuft den Zapfen im Sinne des Uhrzeigers; zwei entgegengerichtete kreuzen dieses; davon ist das eine (mit gestrichelten Linien 1–5 bezeichnete) flach, das andere (mit fein punktierten Linien bezeichnete) steil gewunden. Man kann zwei beliebige sich kreuzende Systeme gleichartiger Parastichen dazu benutzen, die Divergenzen solcher Blattstellungen zu bestimmen. Bezeichnet man irgendein Blatt mit 1 (vgl. dazu die Fig. 108), so erhält man die Nummer des in der Parastiche nächst folgenden Blattes dadurch, daß man zu 1 die Gesamtzahl der gleichartigen Schrägzeilen des Systems addiert, die es rings um den ganzen Stengel gibt. Parastichen mit ungebrochenen Linien gibt es, wie man ohne weiteres abzählen kann, 8; also ist das nächste Blatt in dieser Parastiche 1 + 8 = 9, das nächste 9 + 8 = 17 usw. Gleichartig verlaufende Schrägzeilen von entgegengesetzter Neigung gibt es z. B. gebrochen gestrichelte 5 (fein punktierte aber 13); also sind die auf 1 in der gestrichelten Parastiche folgenden Blätter 1 + 5 = 6, 6 + 5 = 11 usw. (in der punktierten Parastiche dagegen 1 + 13 = 14, 14 + 13 = 27 usw.). Diese Gesetzmäßigkeit rührt daher, daß in jedem System gleichartig verlaufender Parastichen zwischen den benachbarten Blättern einer Parastiche noch so viele Blätter am Stengel befestigt sein müssen, als es außer dieser Parastiche noch weitere Schrägzeilen in dem System gibt (z. B. in dem System mit ungebrochenen Linien 7; 7 Blätter liegen also zwischen 1 und dem nächsten Blatt der Parastiche, demnach muß dieses auf 1 + 7 folgen, also das 9. sein); das gleiche gilt natürlich auch für die Orthostichen. Nummeriert man in dieser Weise alle Blätter, so ergeben die aufeinanderfolgenden Zahlen 1, 2, 3, 4 usw. die Grundspirale und die Divergenz. Der Fichtenzapfen in Fig. 108 hat die Blattstellung 8⁄21: dementsprechend liegen die Blätter 1, 22, 43 usw. in einer Orthostiche übereinander. — Bestimmt man nun bei den verschiedensten Pflanzen mit wechselständigen Blattstellungen die Divergenzen, so fällt auf, daß gewisse Divergenzen ganz besonders häufig sind; sie bilden die Reihe 1⁄2, 1⁄3, 2⁄5, 3⁄8, 5⁄13, 8⁄21, 13⁄34 usw. Diese Brüche haben merkwürdige Beziehungen zueinander: Zähler und Nenner eines jeden sind die Summen der Zähler und Nenner der beiden vorausgehenden Brüche. Die Divergenzen dieser Reihe bewegen sich sämtlich zwischen 1⁄2 und 1⁄3 des Stengelumfanges. Sie weichen um so weniger voneinander ab, je mehr sie sich vom Anfang der Reihe entfernen, und nähern sich immer mehr einem Winkel von 137° 30′ 28″. Man hat diese Reihe als die Hauptreihe der Blattstellungen bezeichnet. Daneben gibt es auch noch andere Reihen ähnlicher Art. Die Hauptreihe ist aber vielleicht allen anderen Reihen dadurch überlegen, daß bei ihren Brüchen mit der kleinsten Zahl von Blättern die möglichst gleichmäßige Verteilung aller an der Sproßachse erreicht wird. Die Entdecker der Reihen waren CARL SCHIMPER und ALEXANDER BRAUN.