ERSTER TEIL Allgemeine Botanik. (continued 5)
Reading edition
In unseren Gegenden sind die Epiphyten nur durch rindenbewohnende Algen, Flechten und Moose vertreten, die vollständige Austrocknung vertragen. In den Tropen kommen aber auch sehr viele Kormophyten als Epiphyten vor, z. B. in der Gruppe der Pteridophyten, in den Familien der Orchideen, Bromeliaceen, Araceen u. a.
Die Schwierigkeiten der Wasserversorgung machen es verständlich, daß die Epiphyten fast sämtlich ausgesprochene Xerophyten sind (Fig. 196). Sie befestigen sich an ihren Unterlagen mit Haftwurzeln; das sind verhältnismäßig kurze, unverzweigte und das Licht fliehende Wurzeln, die fremde Gegenstände umklammern und oft Drähten gleichen. Außer diesen Haftwurzeln werden übrigens bei vielen Araceen auch viel längere Nährwurzeln ausgebildet, die frei nach unten in die Luft hängen und ohne jede Verzweigung nach abwärts wachsen, bis sie den Boden erreichen, worin sie sich verzweigen. Die Mehrzahl aber, die keine Wurzeln bis zum Erdboden treibt, ist auf das Wasser der Regengüsse angewiesen, das sie meist mittels besonderer Apparate aufnehmen und sammeln. Baumbewohnende tropische Orchideen und auch einige Araceen besitzen zur Aufnahme von Regen an ihren Luftwurzeln ein besonderes Gewebe: die mehrschichtige Epidermis ist eine Hülle, Wurzelhülle oder Velamen, die in manchen Fällen nicht unbeträchtlich dick wird. Ihre Zellen, die den lebenden Inhalt einbüßen und in den Zellwänden meist schrauben- oder netzförmige Verdickungen und häufig auch Löcher besitzen, sind je nach dem Feuchtigkeitsgrade der Umgebung mit Luft oder mit Wasser gefüllt. Sie saugen wie Fließpapier das Wasser auf. Sind die Zellen mit Luft gefüllt, so erscheint die Hülle weiß; enthalten sie Wasser, so schimmert das innere Gewebe mit grüner Farbe durch. Bei anderen epiphytischen Orchideen und Araceen bilden die nach aufwärts wachsenden Luftwurzeln ein reichverzweigtes Geäst, in dem sich durch Verwesung daraufgefallener Blätter Humus und darin auch Wasser ansammelt. Namentlich unter den Farnen aber finden sich Epiphyten, deren Blätter den Humus sammeln: Bei Asplenium nidus sitzen die Blätter dem dichten Stamm in kurzer Rosette an; der trichterförmige Raum über der Stammknospe, den sie einschließen, füllt sich mit Humus. Bei Polypodium- und Platycerium-Arten aber werden besondere Blätter als „Nischenblätter“, „Mantelblätter“ usw. ausgebildet, die alle der Sammlung von Humus und von Wasser dienen. Noch weiter geht in der Umbildung der Blätter die Asclepiadee Dischidia Rafflesiana (Fig. 211): Einige Blätter sind als tiefe Urnen mit engen Mündungen ausgebildet; in die Urnen, in denen das Transpirationswasser kondensiert wird, wachsen Wurzeln hinein, verzweigen sich darin und nehmen zusammen mit diesem Wasser wertvolle stickstoffhaltige Substanzen auf; die Urnen enthalten nämlich gewöhnlich Kolonien von Ameisen, deren Fäkalien und abgestorbene Leiber.
Ein Extrem unter diesen Epiphyten sind die amerikanischen Bromeliaceen, bei denen Wurzeln überhaupt fehlen können (Tillandsia usneoides) oder nur Haftorgane sind. Die Wasseraufnahme erfolgt hier ausschließlich durch eigenartige schildförmige Schuppenhaare, die auf den Blättern sitzen. Nicht selten bilden bei diesen Gewächsen die dicht aneinander schließenden Blattbasen einen trichterförmigen Hohlraum, in dem sich Wasser sammelt (Zisternenepiphyten).
c) Anpassungen der grünen Kormophyten an besondere Ernährungsweise.
Solche kommen bei den insektenfressenden, fleischfressenden oder karnivoren Pflanzen vor[108]. Das sind Pflanzen, die zwar mit grünen Blättern organische Substanzen aus Kohlensäure bilden und völlig autotroph leben können, außerdem aber mit Einrichtungen zum Fangen und Festhalten kleiner Tiere, vor allem Insekten, ausgestattet sind und durch ausgeschiedene Enzyme die Beute so weit wie möglich auflösen, verdauen und als Nahrung resorbieren.
Für den Tierfang bestehen bei den karnivoren Pflanzen die mannigfaltigsten Einrichtungen. Auf den Droserablättern stehen wie Schneckenfühler gestaltete, von einem Leitbündel durchzogene Auswüchse oder Emergenzen, die Tentakeln (Fig. 212, 213), deren Drüsenköpfchen ein klebriges Sekret in Form glänzender Tröpfchen absondern. Insekten bleiben an diesen Drüsen hängen, kommen bei ihren Befreiungsversuchen mit noch mehr Drüsen in Berührung und werden dadurch um so fester gehalten. Durch den Reiz veranlaßt, krümmen sich sämtliche Tentakeln nach dem Opfer hin, wobei die Blattfläche selbst hohl wird und das Insekt umfaßt.
Bei der ebenfalls in Deutschland heimischen Pinguicula legt sich einfach der Blattrand um das kleine Tier, das an den winzigen Hautdrüsen hängen bleibt.
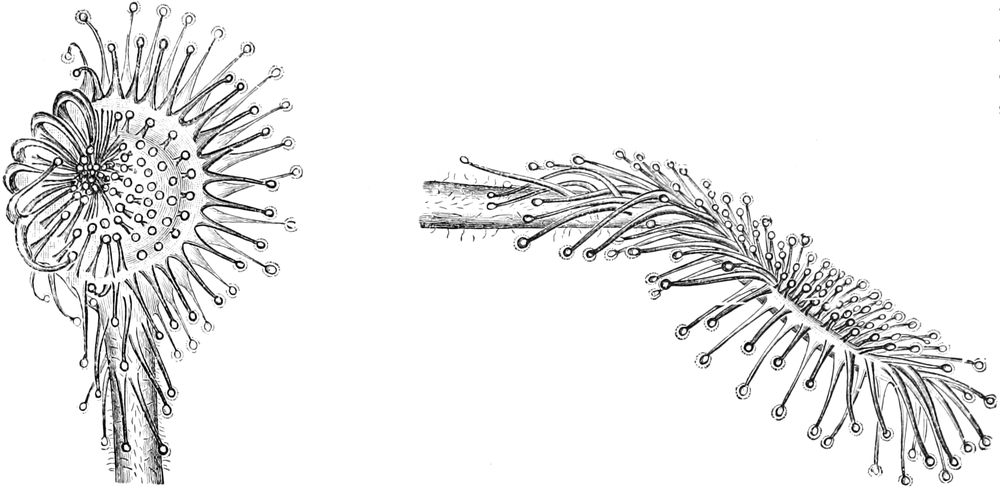
Fig. 212. Blätter von Drosera rotundifolia, links mit teils eingekrümmten Tentakeln, von oben; rechts mit ausgebreiteten Tentakeln, von der Seite gesehen. Vergr. 4fach. Nach DARWIN.
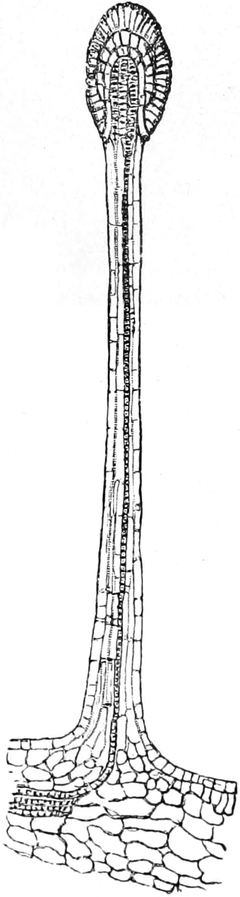
Fig. 213. Digestionsdrüse von Drosera rotundifolia. Vergr. 60. Nach STRASBURGER.
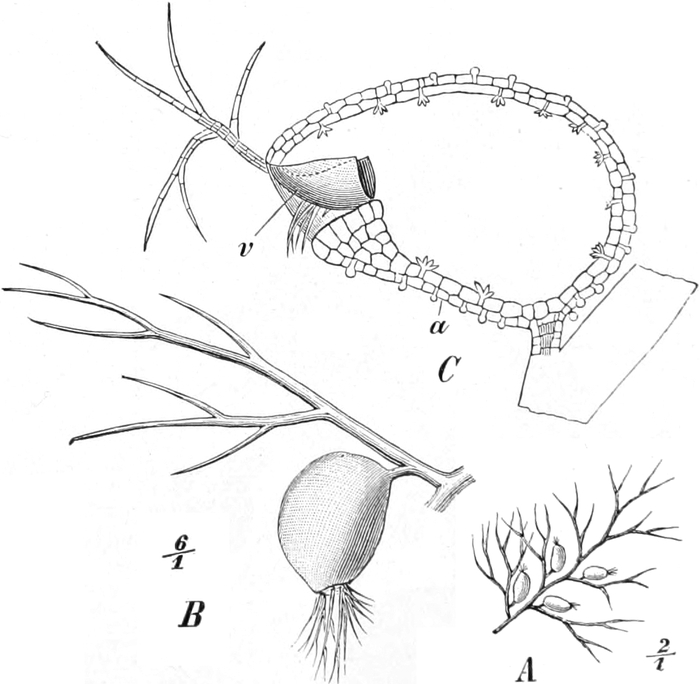
Fig. 214. Utricularia vulgaris. Bei A ein Blattstück mit mehreren Blasen. Vergr. 2. Bei B ein Fiederteil des Blattes mit Blase. Vergr. 6. Bei C eine Blase im Längsschnitt. Vergr. etwa 28. In Cv Klappe, a Blasenwandung. A, B nach SCHENCK, C nach GOEBEL.
Die auch bei uns, in stehenden Gewässern, vorkommenden Utricularia-Arten tragen an den zerschlitzten Blättern (Fig. 214) in grüne Blasen umgewandelte Blattzipfel. Die Blasen sind mit Wasser gefüllt und besitzen eine kleine viereckige Öffnung, die mit einer elastischen, nur nach innen sich öffnenden Klappe verschlossen ist. Berühren kleine Wassertiere, z. B. Krebse, eine der vier hebelartig wirkenden Borsten, die am unteren Rande des Blasendeckels (Fig. 214 C) nach außen hervorstarren, oder den Deckel selbst, so werden sie durch eine eigenartige „Schluckbewegung“ der Blase, die durch Entspannung der durch einen Kohäsionsmechanismus (vgl. S. 296) elastisch gespannten Blasenwände zustandekommt, mit einem Wasserstrom in die Blase gesogen; darauf springt die Klappe sogleich in ihre Ausgangsstellung zurück und verwehrt ihnen den Austritt, so daß man oft viele Tierchen in einer Blase gefangen findet. Haare, die von der inneren Blasenwand entspringen, besorgen die Resorption der verdauten tierischen Körper und eines Teiles des Wassers in den Blasen, wodurch eben die Blasenwände elastisch gespannt und zu der Schluckbewegung bereit gemacht werden[109].
Stattlicher und noch leistungsfähiger sind die Fangeinrichtungen ausländischer Karnivoren. Geradezu überraschend ist die Schnelligkeit, mit der die Venusfliegenfalle, Dionaea, auf den Torfmooren Carolinas ihre gezähnten Blatthälften zusammenklappt und das Insekt, das sich darauf wagt, gefangen nimmt. Fig. 215 stellt ein Dionaeablatt in offenem Zustande, zum Fange bereit, dar. Ähnlich gebaute Blätter besitzt die auch bei uns heimische, aber sehr seltene Wasserpflanze Aldrovanda.
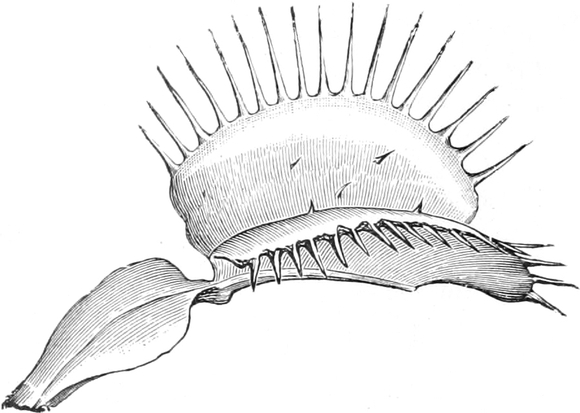
Fig. 215. Ein Blatt der Venusfliegenfalle (Dionaea muscipula). Der schraffierte Teil der Innenfläche, dicht mit Verdauungsdrüsen besetzt. Vergr. 4fach. Nach DARWIN.
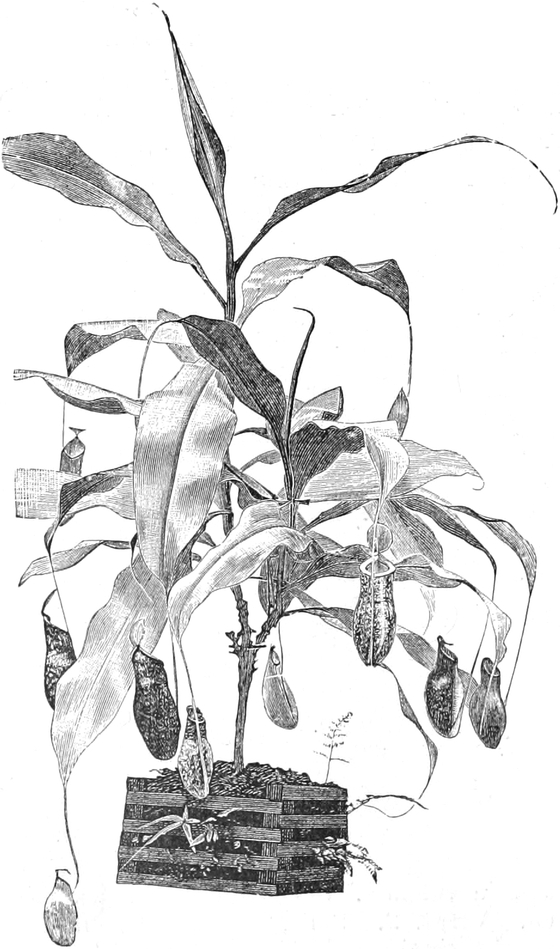
Fig. 216. Nepenthes robusta. Gewächshauspflanze. 1⁄9 nat. Gr. Nach SCHENCK.
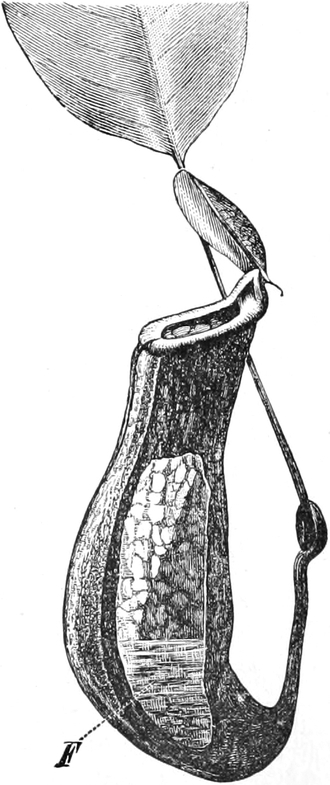
Fig. 217. Blattkanne einer Nepenthes. Am Grunde der Kanne, aus der ein Stück herausgeschnitten gedacht ist, steht die von den Blattdrüsen ausgeschiedene Flüssigkeit F, in der hineingefallene Tiere verdaut werden. 1⁄2 nat. Gr. Nach NOLL.
Bei anderen ausländischen Karnivoren tritt vorherrschend die Kannenform als Tierfalle auf, so bei Nepenthes, Cephalotus, Sarracenia, Darlingtonia. Die Kannen entstehen, indem ganze Blätter oder Teile dieser sich zu krugartigen Behältern ausbilden (vgl. Fig. 216, 217), die meist von einem Deckel, wohl zur Abhaltung des Regenwassers, überdacht sind. Bei Nepenthes z. B. geht jede Kanne, wie Goebel nachgewiesen hat, aus einer entsprechend umgeformten Blattspreite hervor; der Blattgrund verbreitert sich zugleich spreitenförmig; der Blattstiel, der beide trennt, kann eine Ranke sein. Im Grunde solcher Kannen steht eine von Drüsen ausgeschiedene wäßrige Flüssigkeit. Tiere, die bei Nepenthes durch Honigabscheidungen am Rande der Kanne angelockt werden und den Kannenrand betreten, gleiten aus, fallen in die Flüssigkeit und werden im Innern der Kannen durch kleine Haare, die alle nach abwärts gerichtet sind, am Zurückklettern verhindert.
B. Heterotrophe Kormophyten[110].
Neben den grünen Kormophyten, die das Licht brauchen, um mittels des Chlorophylls aus Kohlensäure und Wasser die organischen Substanzen aufzubauen, und wohl auch stark transpirieren müssen, um die Bodennährsalze in genügender Menge in ihrem Körper anzureichern, gibt es wie bei den Thalluspflanzen auch solche, die alle oder einen Teil ihrer organischen Substanzen von außen beziehen, und zwar meist aus lebenden Organismen (Schmarotzer oder Parasiten). Diese Formen brauchen also kein Licht und keine Transpiration. Ihrer besonderen Ernährungsweise entspricht ein ganz eigenartiger, von den grünen Kormophyten völlig abweichender Bau. Er führt vor Augen, wie sehr die Chlorophyllfunktion mit der Ausgestaltung der grünen Pflanze in Beziehung steht. Mit dem Zurücktreten oder dem Verschwinden des Chlorophylls in den Schmarotzern gehen die besonders für die Assimilation und die Transpiration eingerichteten großen Blattflächen verloren; die Blätter werden zu unscheinbaren gelblichen Schuppen oder fehlen ganz. Auch ihre Träger, die Sproßachsen, sind mehr oder weniger reduziert und gelblich, nicht grün gefärbt. Da eine lebhafte Transpiration nicht mehr stattfindet, so schwinden bei vielen Formen auch die Wurzeln. Infolgedessen bleiben auch die Gefäßteile der Leitbündel schwach entwickelt, und eine Holzbildung findet höchstens in ganz geringem Umfange statt. Diesem Fortfall der Assimilationseinrichtungen steht aber die Ausbildung neuer Einrichtungen gegenüber, die es den Parasiten gestatten, in den Körper des befallenen Organismus bis zu den Leitungsbahnen einzudringen und derart in dessen Stoffwechsel einzugreifen, daß er seinen Wirt ausgiebig berauben kann.
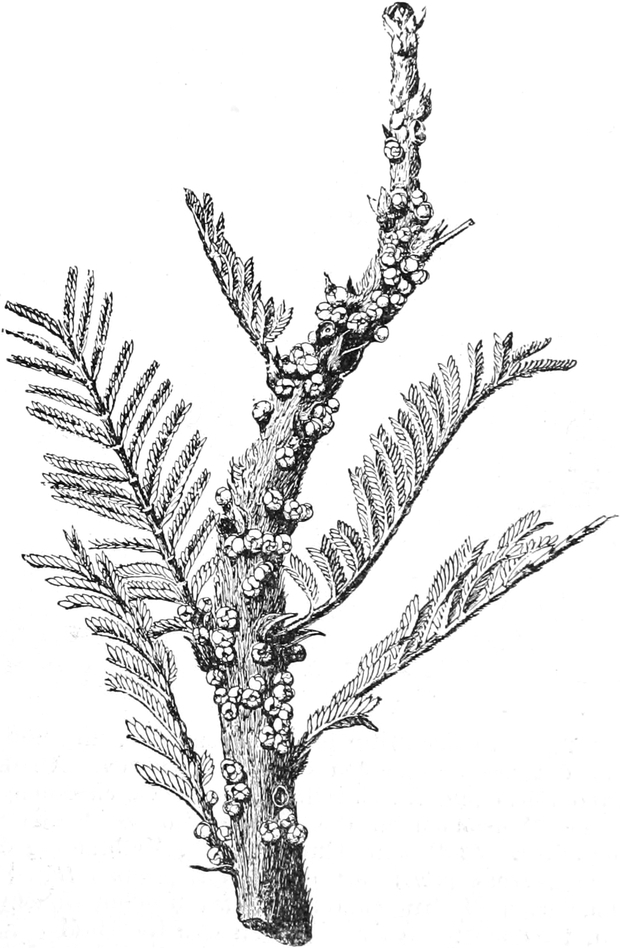
Fig. 218. Ein Leguminosenzweig, dicht besetzt mit hervorbrechenden Blüten des Schmarotzers Pilostyles Ulei Solms (Rafflesiacee). Nach GOEBEL, Organographie.
Manche ausländische Schmarotzerpflanzen schließlich, so besonders die Rafflesiaceen, sind derart in parasitischer Lebensweise aufgegangen, daß ihre Vegetationsorgane äußerlich überhaupt nicht mehr sichtbar und gar nicht mehr kormophytisch gegliedert sind, sondern als hyphenähnliche Stränge ganz innerhalb der Wirtspflanze wachsen, aus der die fremdartigen Blüten des Schmarotzers überraschend hervorbrechen, z. B. Pilostyles-Arten (Fig. 218). Auch die größte der bekannten Blüten, die bis zu 1 m Durchmesser erreichende Blüte der in Sumatra lebenden Rafflesia Arnoldi, sitzt den Wurzeln ihrer rebenartigen Nährpflanze, einer Cissus-Art, in dieser Weise unmittelbar auf.
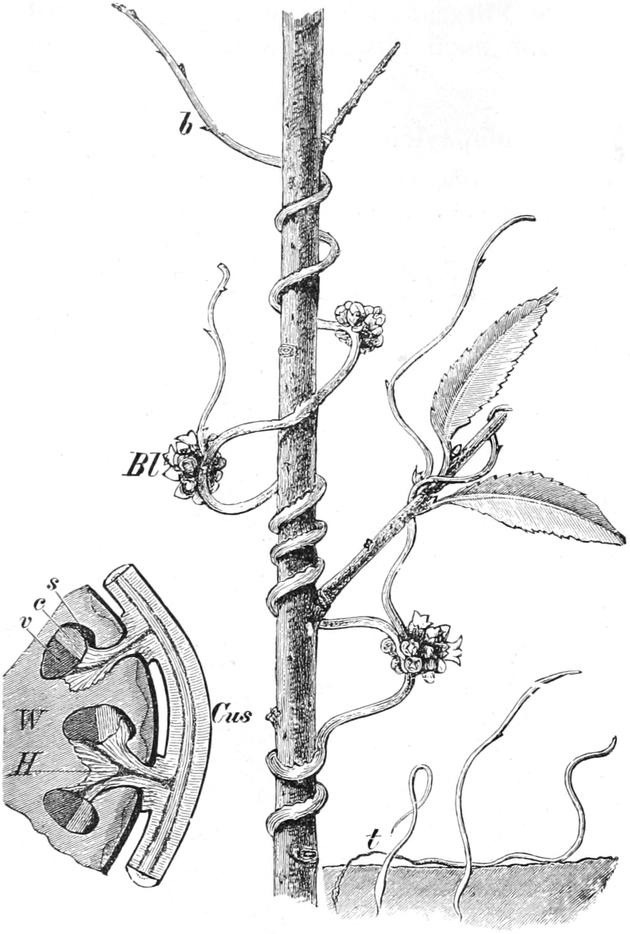
Fig. 219. In der Mitte ein Weidenzweig, umwunden von der schmarotzenden Cuscuta europaea. An den warzenförmigen Anschwellungen des Cuscutastengels treten Haustorien in die Weide ein. b Reduzierte Blättchen. Bl Blütenknäuel. Links: Verbindung des Schmarotzers (Cus) mit einer Wirtspflanze W. Die Haustorien H dringen teils in das Rindenparenchym ein, teils legen sie sich dicht an den Gefäßteil v und den Siebteil c der Leitbündel an, deren Sklerenchymscheide s sie zum Teil abheben. Rechts: Keimende Cuscuten: der längste Keimling auf dem Boden kriechend, indem er vorn auf Kosten des absterbenden Teils t weiterwächst. Nach NOLL.
Als Beispiel einer einheimischen parasitisch lebenden Phanerogame sei hier die zur Familie der Convolvulaceen gehörige Cuscuta europaea behandelt, obgleich der Chlorophyllgehalt ihrer Sproßachsen, denen die Laubblätter fehlen, noch an die normal assimilierenden Pflanzen erinnert, wenn er auch nur sehr gering ist. Rechts unten in Fig. 219 sind Cuscutakeimlinge dargestellt, wie sie sich im Frühjahr aus dem Samen entwickeln. Schon der Keimling verzichtet auf die Ernährung mittels der Kotyledonen, die verkümmert sind; auch sein Keimwürzelchen stirbt immer bald ab. Das Keimstengelchen aber streckt sich sofort zu einem langen dünnen Faden, dessen freies Ende sich in weitem Kreise herum bewegt und dadurch eine in seinem Bereiche wachsende Nährpflanze auffindet. Ist von dem Orte der Keimung aus keine Wirtepflanze zu erreichen, so vermag der Keimling eine kurze Strecke weiter zu kriechen, indem er am hinteren Ende (Fig. 219 t) abstirbt und auf Kosten der diesem Teile entzogenen Nährstoffe am vorderen Ende sich verlängert. Trifft das freie Fadenende bei seinem Kreisen aber schließlich auf eine Nährpflanze, z. B. einen Weidenschoß oder einen Brennesselstengel, so umschlingt er diese wie eine Schlingpflanze. Nach kurzer Zeit entwickeln sich aus der dem Wirte angeschmiegten Seite zunächst papillöse Wucherungen der Epidermis, die in die Gewebe der Wirtspflanze eindringen. Finden diese Prähaustorien dort zusagende Verhältnisse vor, so folgt ihnen sehr rasch die Ausbildung der eigentlichen Saugorgane, der Haustorien (H). Diese brechen aus dem Innern des Parasiten hervor und besitzen in hohem Grade die Fähigkeit, in die Wirtspflanze einzudringen. Sie breiten sich scheinbar ohne Schwierigkeit im fremden Gewebe aus, legen sich eng an dessen Leitbündel an, während einzelne, aus dem Körper des Haustoriums hervorsprossende freie Zellreihen wie Pilzfäden in dem zarten Parenchym vordringen und diesem weitere Nahrung entnehmen. Da, wo sich das Haustorium an den Gefäß- und Siebteil eines Leitbündels herangedrängt hat, bilden sich in ihm Elemente des Gefäßteils und des Siebteils aus, die sich einerseits an die Gefäß- und Siebteile des Wirtes organisch anschließen, andererseits aber mit den Leitbündeln des Schmarotzerstengels in Verbindung treten (Fig. 219 links). Wie ein der Wirtspflanze angehöriges Seitenorgan entnimmt alsdann der Schmarotzer dieser sein Transpirationswasser und seine sämtlichen Nährstoffe.
Die Samen der ebenfalls bei uns einheimischen schmarotzenden Orobanchen keimen erst bei Berührung mit den Wurzeln der Wirtspflanze. Ihre Haustorien bleiben auf die Wurzeln ihrer Nährpflanze beschränkt; es kommen nur die hellgelblichen, rötlichbraunen oder amethystblauen, spargelartigen Blütensprosse neben dem Wirte aus der Erde hervor. Auch die Orobanchen enthalten noch geringe Mengen assimilierender Chromatophoren (Fig. 772). Beide, Cuscuta und Orobanche, sind gefürchtete Feinde der Landwirtschaft, die an Kulturgewächsen, erstere als „Teufelszwirn“, „Flachs- und Kleeseide“, letztere als „Würger“, großen Schaden anrichten und schwer auszurotten sind.
Ähnlichen Habitus wie die Orobanche-Arten haben einige Formen, die man zunächst wohl nicht für Parasiten halten wird, weil sie im Humus des Waldbodens leben: Orchideen (Neottia, Corallorrhiza, Epipogon) und die Pirolacee Monotropa. Der Mangel an Chlorophyll und die Reduktion der Blätter zu Schuppen, bei Corallorrhiza auch die Reduktion der Wurzeln (vgl. Fig. 220 das wurzellose Rhizom) beweisen aber schon, daß auch diese Formen organische Substanz von außen beziehen. Sie können aber den Humus nicht selbst ausnutzen, sondern sind darauf angewiesen, daß humusbewohnende Pilze, die daraus ihre Nahrung beziehen, in ihre unterirdischen Gewebe mit einem Teil ihres Myzeliums eindringen; ein Teil der eingedrungenen Pilzhyphen wird alsdann verdaut. Die Kormophyten sind also gewissermaßen Parasiten auf Humuspilzen; ihre verpilzten Wurzeln nennt man Mykorrhizen.
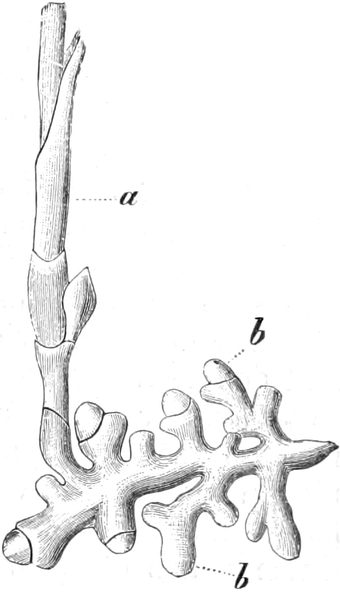
Fig. 220. Rhizom von Corallorrhiza innata. Bei a Blütenschaft, bei b Anlagen neuer Rhizomzweige. Nat. Gr. Nach SCHACHT.
Gegenüber diesen Schmarotzern, die in die größte Abhängigkeit von ihren Nährpflanzen geraten sind, gibt es aber auch solche, die äußerlich noch sehr selbständig erscheinen, da sie mit großen grünen Blättern assimilieren können. Trotzdem sind sie zugleich Parasiten, da sie sich nur dann normal entwickeln, wenn ihr Wurzelsystem mit fremden Wurzeln oder zur Not auch mit denen der Artgenossen durch Haustorien verbunden ist („Halbschmarotzer“). So leben z. B. die Santalacee Thesium und die Rhinanthaceen Rhinanthus, Euphrasia, Pedicularis, Bartschia, Melampyrum und Tozzia, von denen sich die letzte, zumal in den ersten Entwicklungsstadien, am meisten ausgeprägt parasitisch ernährt.
Auch unsere einheimische, auf Baumkronen schmarotzende Mistel besitzt, wie viele ihrer ebenso lebenden fremdländischen Verwandten unter den Loranthaceen, noch stattliche Blätter, aber reduzierte Wurzeln und ist so reich an Chlorophyll, daß sie wohl ihren Bedarf an Kohlehydraten vollständig selbst zu decken vermag.
II. Fortpflanzungsorgane[111].
A. Bedeutung der Fortpflanzung für den Organismus. Gewaltsamer oder natürlicher Tod ist das Ende jedes Organismus. Für den Fortbestand aller lebenden Wesen ist also die Fortpflanzung ebenso unbedingt notwendig wie die Ernährung. Wie im Worte Fortpflanzung schon zum Ausdruck kommt, ist ihr wichtigstes Merkmal, daß ein Individuum Teilen von sich, die zu neuen Individuen werden, Fortdauer sichert. Die einfachste Art der Fortpflanzung liegt bei vielen einzelligen Pflanzen in der Zweiteilung ihrer Zellen und Trennung der Tochterzellen voneinander vor. Solchen Formen schließen sich gewisse einfach organisierte vielzellige Thallophyten (z. B. Spirogyra) aufs engste an, insofern ihr Körper zu Zeiten in seine Einzelzellen zerfällt, die alsdann durch wiederholte Teilung ebenso viele neue Tochterindividuen liefern. Meist aber erfolgt die Fortpflanzung durch die Ausbildung besonderer Keime, die sich von der Mutterpflanze ablösen und später durch Keimung zu neuen Individuen werden. So entstehen junge Tochterorganismen, Keimlinge, die die Entwicklung der Mutterpflanzen wiederholen.
Während sich bei den Einzelligen und bei einfachen Vielzelligen eine jede Zelle an der Fortpflanzung beteiligen kann, ist bei allen höher organisierten Pflanzen eine Arbeitsteilung zwischen Vegetationsorganen und Fortpflanzungsorganen durchgeführt, d. h. solchen besonders gestalteten Organen, denen die Aufgabe zufällt, Keime auszubilden. Diese Arbeitsteilung wird um so auffälliger und zieht um so mehr Teile des Körpers in den Dienst der Fortpflanzung, je höher organisiert der Organismus ist. In erster Linie auf die Verschiedenartigkeit des Baues und der Stellung dieser Fortpflanzungsorgane gründet sich die Einteilung des Pflanzenreiches in Klassen, Ordnungen, Familien usw.
B. Allgemeine Eigenschaften der Keime. Auch der Bau der Keime steht in engster Beziehung zu den Aufgaben, denen sie zu dienen haben.
Bezeichnend für die meisten Keime ist ihre geringe Größe im Verhältnis zu dem Mutterorganismus, der sie hervorbringt; dadurch wird den Mutterpflanzen ohne allzuviel Materialaufwand die Bildung sehr zahlreicher Keime und den Keimen die Verbreitung erleichtert.
Bei der Fortpflanzung handelt es sich nicht nur um die Bildung eines neuen Individuums an Stelle des Mutterindividuums, sondern um eine Vermehrung der Individuen. Da viele, manchmal die meisten Keime überhaupt nicht die zur Keimung und zum Wachstum günstigen Verhältnisse finden, auch ein großer Teil der Keimlinge abstirbt, ehe er sich fortpflanzen kann, so würde Ausbildung nur eines Keimes gleichbedeutend mit dem baldigen Untergange der Art sein. So ist die ungeheure, anscheinend verschwenderische Menge von Keimen für die Fortpflanzung bezeichnend. Ein Hutpilz oder ein Farnkraut kann Millionen von Keimen bilden; ein Pappelbaum soll nach BESSEY jährlich 28 Millionen solcher reifen.
Weiter muß dafür gesorgt werden, daß die Keime von der Mutterpflanze losgelöst und daß sie danach möglichst weit verbreitet werden; denn an den Stellen, wo sie entstehen, sind meist nicht die Bedingungen für ihre Keimung und ist kein Raum für die Entwicklung der Tochterorganismen vorhanden.
Endlich ist es nötig, daß den Keimen vom Mutterorganismus Reservestoffe mitgegeben werden, damit sie sich weiter entwickeln können, bis sie sich selbst zu ernähren vermögen.
Sehr häufig haben die Keime die Aufgabe, den Organismus über Zeiten, die ihr Leben gefährden, z. B. über eine Kälte- oder Trockenperiode, hinüber zu retten. Sie befinden sich alsdann im Ruhezustand (S. 186), worin sie viel widerstandsfähiger gegen schädigende Einflüsse (Austrocknung, Frost, Hitze) sind; dicke Hüllen gewähren solchen Keimen oft außerdem Schutz. Die Keimung beginnt bei solchen Keimen erst nach Eintritt günstiger Lebensbedingungen.
C. Einteilung der Keime. Die entwicklungsfähigen Keime selbst sehr hochorganisierter Vegetationskörper sind einzellig (Keimzellen, Sporen) oder mehrzellig (Brutkörper und Samen). Unschwer lassen sich zwei Typen der Fortpflanzung in fast allen Klassen des Gewächsreiches erkennen.
Der eine zielt auf die Bildung von Keimzellen oder von Brutkörpern hin, die meist nach ihrer Lostrennung von der Mutterpflanze, ohne weiteres, entweder sofort oder nach einer Ruhezeit, keimen und zu neuen selbständigen Einzelwesen heranwachsen. Diese Fortpflanzungsweise hat man die vegetative, ungeschlechtliche oder monogene genannt.
Der zweite bei der Fortpflanzung eingeschlagene Weg ist dagegen viel umständlicher. Es werden dabei zweierlei Keime erzeugt. Sie sind, jeder für sich, gewöhnlich unfähig, auszukeimen, gehen vielmehr in kurzer Zeit zugrunde, wenn sie keine Gelegenheit haben, sich paarweise zu vereinigen (Befruchtung, Geschlechtszellen); erst wenn zwei Geschlechtszellen miteinander zu einer Zelle verschmolzen sind, wird das Produkt entwicklungsfähig. Diese Art der Fortpflanzung wird als die sexuelle, geschlechtliche oder digene bezeichnet.
Die meisten Gewächse pflanzen sich auf beide Weisen fort; die sexuelle Fortpflanzung fehlt nur bei niedrig organisierten Gruppen, so den Bakterien, Cyanophyceen, manchen Algen und Pilzen.
Erst die Befruchtung befähigt, wie gesagt, die Geschlechtszellen zur Weiterentwicklung. Doch gibt es Ausnahmen, wo eine Geschlechtszelle auch ohne Befruchtung auskeimt. Erfolgt diese Entwicklung aus einer solchen Zelle, also monogen, so spricht man von jungfräulicher Zeugung oder Parthenogenesis[112]. Diese ist im Pflanzenreiche bisher bei Algen, z. B. bei Chara crinita, festgestellt, sowie bei der Keimbildung aus unbefruchteten Eizellen zahlreicher höher organisierter Pflanzenfamilien, wie Kompositen, Ranunculaceen, Rosifloren, Thymelaeaceen, Urticaceen, auch Marsiliaceen.
Bei allen diesen Pflanzen liegt habituelle Parthenogenesis vor, d. h. die Eizellen entwickeln sich ohne Befruchtung ohne weiteres. In anderen Fällen tritt Parthenogenese erst durch experimentelle Eingriffe ein: experimentelle Parthenogenesis.
In bestimmten Fällen wird die Befruchtung von Geschlechtszellen durch einen Verschmelzungsvorgang der Kerne benachbarter vegetativer Gewebezellen ersetzt[113]. So ist es bei dem Prothallium gewisser Kulturformen von Farnkräutern (z. B. von Dryopteris [Lastrea] und Athyrium). Das Verschmelzungsprodukt dient alsdann der Fortpflanzung, während die Geschlechtsorgane des Prothalliums verkümmern.
Ein tieferes Verständnis der Fortpflanzungserscheinungen im einzelnen kann man erst durch genaueres Studium des Entwicklungsganges der Pflanzengruppen gewinnen. Diese Aufgabe fällt dem speziellen Teile unseres Buches zu. Die im folgenden gegebene ganz knappe Übersicht über die Bauvariationen der Keime und der Fortpflanzungsorgane im Pflanzenreich soll nur die für die allgemeine Morphologie wichtigen Tatsachen und Probleme hervortreten lassen.
1. Brutkörperbildung.
Mehrzellige monogene Fortpflanzungskörper, Brutkörper, kommen bei vielen Moosen vor (z. B. bei Marchantia, wo sie in besonderen Organen, den Brutbechern, auf dem Thallus, Fig. 446, 447, erzeugt werden); ferner als Brutknospen in weiter Verbreitung bei Farnpflanzen und Phanerogamen.
Nicht selten lösen sich bei ihnen Seitensprosse ab, die oft durch besonderen Bau als Fortpflanzungskörper kenntlich sind, so etwa die unter- oder oberirdischen Ausläufer (Stolonen). Letztere wachsen z. B. aus der grundständigen Blattrosette der Erdbeerpflanzen als fadenförmige Seitenzweige hervor und tragen Endknospen, die sich bewurzeln und durch späteres Absterben der Ausläufer selbständig werden. Solche der vegetativen Vermehrung dienenden Gebilde bei höheren Pflanzen sind auch viele Knollen und Zwiebeln, ferner die Brutknospen, Brutzwiebeln (Bulbillen, Fig. 221) und die sich loslösenden Überwinterungsknospen (Hibernakeln) zahlreicher Wasserpflanzen (z. B. bei Hydrocharis, Stratiotes).
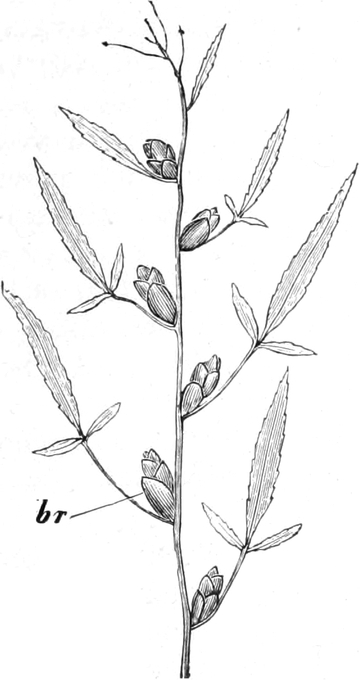
Fig. 221. Zwiebeltragende Zahnwurz (Dentaria bulbifera) mit Brutzwiebel br. Nat. Gr. Nach SCHENCK.
Brutknospen können auch an Orten auftreten, wo gewöhnlich keine Vegetationspunkte vorhanden sind; es sind alsdann Adventivbildungen. Solche werden besonders häufig an Blättern, zumal auf Blattspreiten, ausgebildet; z. B. in den Kerben der Blattränder von Bryophyllum-Arten, auf den Blättern von Cardamine pratensis. Die Blätter von Begonien, Drosera u. a. entwickeln erst nach gewaltsamer Lostrennung von der Mutterpflanze Knospen.
Schließlich sei erwähnt, daß manche Pflanzen, z. B. viele krautige Perennen, ohne besondere vegetative Fortpflanzungskörper auch dadurch sich ungeschlechtlich vermehren, daß ihre verzweigten Rhizome durch Verwesung der älteren, absterbenden Teile in die einzelnen Zweige zerfallen. Auch bei gewissen Meeresalgen kann der Thallus, z. B. durch die mechanischen Wirkungen der Brandung, in Stücke zerlegt werden, die zu ebenso vielen Thalli auswachsen; ja Caulerpa pflanzt sich, wie es scheint, nur auf diese Weise fort.
2. Keimzellenbildung.
a) Ungeschlechtliche Keimzellen (Sporen). Sie bilden sich in zwei Formen aus: 1. Einzelne Zellen, die oft durch Sprossung entstehen, werden als Keimzellen aus dem Zellverband des Körpers losgelöst oder abgeschnürt: Exosporen oder Konidien, so bei vielen Pilzen (Fig. 222). 2. Die Keimzellen entstehen als Endo- oder Sporangiensporen in besonderen Behältnissen (Sporangien), aus deren Wandungen sie durch ein Loch oder einen Riß ausschlüpfen oder ausgestoßen werden (Fig. 223, 229 sp), so bei anderen Pilzen, vielen Algen, den Moosen, Farn- und Samenpflanzen. Diese Sporangien sind bei den Thallophyten Einzelzellen, deren Protoplast sich meist in mehrere oder viele Endosporen teilt (Fig. 223). Bei den Moosen, Farn- und Samenpflanzen sind es dagegen verwickelter gebaute, vielzellige Gewebekörper, in denen eine bis mehrere äußere „sterile“ Zellschichten die Wandung des Behältnisses bilden und nur das davon umschlossene Gewebe, das sporogene Gewebe, Sporen liefert (Fig. 224 sg).
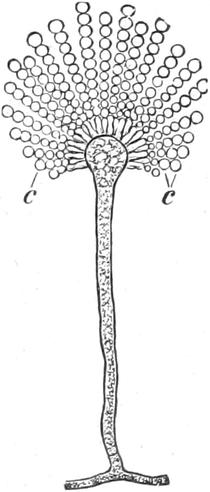
Fig. 222. Konidienbildende Hyphe des Schimmelpilzes Aspergillus herbariorum. Vergr. 540. Nach KNY.
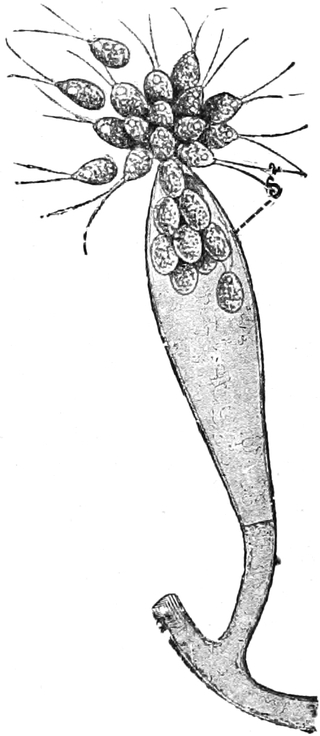
Fig. 223. Saprolegnia mixta. Sporangium, die zweiziligen Zoosporen s2 entlassend. Nach G. KLEBS.
Die ungeschlechtlichen Sporen sind zum Teil angepaßt an die Verbreitung im Wasser, so viele Sporangiensporen bei Algen und Pilzen. Diese Sporen entbehren eine Zellmembran völlig, sind also nackt und meist mit eigenem Bewegungsvermögen im Wasser durch Zilien begabt (Fig. 223, 227 A). Solche Sporangiensporen heißen Schwärmsporen oder Zoosporen, die Behältnisse, in denen sie entstehen, Zoosporangien.
Die Sporen anderer Thallophyten, der Moose, Farn- und Samenpflanzen, sind dagegen angepaßt an die Verbreitung in der Luft, durch den Wind oder durch Tiere. Alsdann sind sie von einer dicken Sporenmembran umgeben und sehr widerstandsfähig gegen Austrocknung.
Bei den Thallophyten entstehen die ungeschlechtlichen Fortpflanzungsorgane an beliebigen oder an bestimmten Stellen des Thallus.
Bei den Moosen sitzt der meist langgestielte, große Sporenbehälter ebenfalls entweder auf dem Thallus oder bei den beblätterten Formen an den Enden beblätterter Zweige (Fig. 456).
Bei den Farnpflanzen werden die in der Regel ziemlich kleinen und unansehnlichen Sporangien in sehr großer Zahl meist an Blättern, den Sporophyllen, ausgebildet (Fig. 473). Diese können den Laubblättern völlig gleichen; häufig aber ist eine Arbeitsteilung eingetreten zwischen Laubblättern und Sporophyllen. Letztere dienen alsdann vorwiegend oder nur noch der Erzeugung von Sporangien und haben dementsprechend einen ganz anderen Bau als die Laubblätter, nämlich keine flächenförmig entwickelten und grünen Spreiten. Nicht selten werden die Sporophylle in größerer Zahl an Enden von Zweigen, meist begrenzten Wachstums, gebildet: so bei den Schachtelhalmen und Bärlappgewächsen (vgl. Fig. 488, 493). Die Sproßenden, die mit den Sporophyllen besetzt sind, haben ein ganz anderes Aussehen als die vegetativen; sie dienen ebenfalls nur noch der Fortpflanzung und sterben danach ab. Sie gleichen Zäpfchen oder Ähren, werden deshalb auch Sporophyllzapfen oder Blüten genannt. Die einfachste Blüte ist also das Ende eines Sprosses, das Sporophylle trägt. Diese Zäpfchen können wohl an ihrer Basis von einer Hülle aus einigen schuppenförmigen, aber sterilen Blättern umgeben werden.
Auch bei den Samenpflanzen werden die Sporangien in solchen besonderen Sproßteilen, in Blüten gebildet, die mit allen ihren Gliedern nicht mehr der Ernährung, sondern nur noch der Fortpflanzung dienen. Diese Blüten sind denen der Farnpflanzen homolog, also wieder stark metamorphosierte Teile von Laubsprossen, und zwar Enden von Lang- oder meist Kurztrieben, deren Blattanlagen nicht zu Laubblättern werden, sondern sich zu den dicht zusammengedrängt stehenden andersartigen Blattgebilden der Blüte, zu Kelch-, Kron-, Staub- oder Fruchtblättern umbilden.
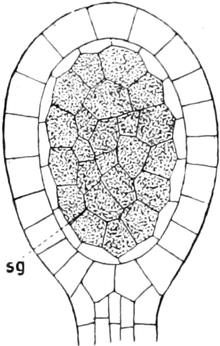
Fig. 224. Schematisches Bild des Sporangiums einer Farnpflanze mit steriler zelliger Wandung und mit sporogenem Gewebe sg.
Die Staubblätter oder Staubfäden entwickeln in vielzelligen Sporangien mit mehrschichtiger Wandung, den Pollensäcken, in großer Zahl die Pollenkörner (den Blütenstaub): zunächst einzellige Sporen (Fig. 32). An den Fruchtblättern dagegen, die bei den Gymnospermen frei, bei den Angiospermen zum geschlossenen Fruchtknoten verwachsen sind, entstehen kurzgestielte, ovale Gewebekörper von verwickeltem Bau, die Samenanlagen, die in ihrem Innern je eine Spore einschließen.
Bei den Gymnospermen[114] haben die zapfenähnlichen Blüten (vgl. Fig. 604–607), die nur aus zahlreichen, meist schraubig angeordneten, schuppenförmigen Staub- oder Fruchtblättern bestehen, noch die größte Ähnlichkeit mit den Sporophyllähren der Lycopodiaceen. Bei den Angiospermen[114] erhält aber die Blüte eine meist völlig abweichende Gestalt (Fig. 225): 1. durch die Beschränkung der quirlständigen Blattgebilde auf eine oft kleine und meist konstante Zahl; 2. durch die Blütenblätter, die in Form von grünen und derben Kelchblättern und oft andersfarbigen und zarten Kronblättern zur Ausbildung gelangt sind, 3. durch die pfriemförmigen Staubblätter (Staubgefäße) und endlich 4. durch die Verwachsung der Fruchtblätter zu Behältern, den Fruchtknoten. Alle diese Teile sind in regelmäßiger Weise in der Blüte angeordnet. In der typischen Angiospermenblüte wechseln nämlich fünf gleichgliedrige Wirtel von Blattgebilden alternierend ab (Fig. 226): der äußerste Wirtel kommt den Kelchblättern zu, die die jugendlichen Blütenteile in der Blütenknospe umhüllen und schützen, der zweite wird durch die Kronblätter gebildet, der dritte und vierte von den Staubblättern, der oberste fünfte von den Fruchtblättern[114], [115]. Diese Blattgebilde, die der sehr kurzen, vielfach auch abgeflachten oder ausgehöhlten Blütenachse entspringen, sind oft untereinander und in manchen Fällen auch mit der Achse verwachsen; eingehende vergleichende und entwicklungsgeschichtliche Untersuchungen klären alsdann häufig erst den Sachverhalt auf.
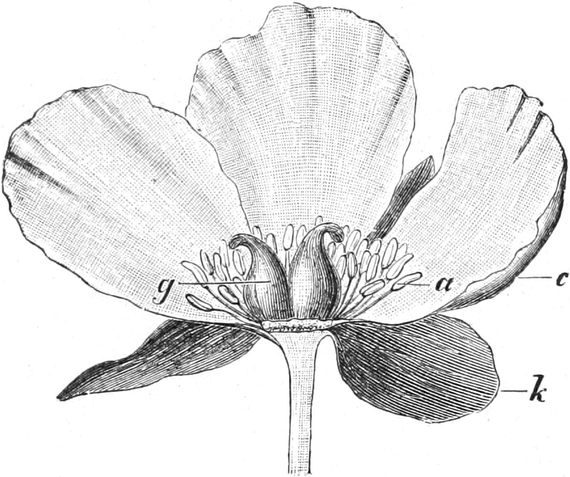
Fig. 225. Blüte von Paeonia peregrina. k Kelch, e Krone, a Staubblätter, g Fruchtblätter. Die vorderen Kelchblätter, Kronblätter und Staubblätter wurden entfernt, um die beiden, zwei getrennte Fruchtknoten bildenden Fruchtblätter zu zeigen. 1⁄2 nat. Gr. Nach SCHENCK.
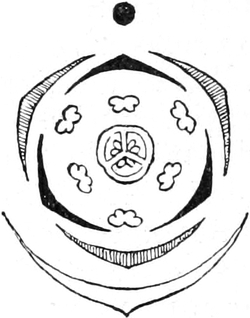
Fig. 226. Diagramm der Liliaceenblüte, darunter das Deckblatt; darüber, durch einen schwarzen Punkt angedeutet, die Mutterachse. Nach STRASBURGER.
b) Geschlechtliche Keimzellen (Sexualzellen oder Gameten). 1. Verschiedene Formen der Sexualzellen und Sexualorgane. Auch die sexuelle Fortpflanzung tritt uns im Pflanzenreiche in sehr mannigfaltigen Formen entgegen, deren Extreme zwar sehr verschieden, aber durch zahlreiche Übergänge verbunden sind.
Die Geschlechtszellen oder Gameten sind bei der einfachsten Art der sexuellen Fortpflanzung, wie wir sie bei niederen Algen und Pilzen finden, zwei völlig gleich große und gleich gestaltete, meist nackte Protoplasten, die wie asexuelle Schwärmsporen aussehen, aber miteinander kopulieren (Isogamie Fig. 227 B). Man nennt die Zellen, in denen sie auch ganz wie Sporangienschwärmsporen in Ein- oder Mehrzahl aus den Protoplasten entstehen, Gametangien, das Kopulationsprodukt Zygote oder Zygospore (Fig. 227 B 4). Alles spricht dafür, daß solche Gameten den Schwärmsporen, von denen sie sich oft nur durch geringere Größe unterscheiden, und desgleichen die Gametangien den Sporangien homolog, d. h. durch Umbildung aus ihnen phylogenetisch entstanden sind. Derartige Gameten können mit Zilien aktiv beweglich sein. Sie suchen sich im Wasser gegenseitig auf, um paarweise zu kopulieren (Fig. 227 B).
Nicht selten sind aber schon bei Algen und Pilzen und ganz allgemein bei den Moosen, Farn- und Samenpflanzen die Gameten ungleich groß (Heterogamie); alsdann bezeichnet man den größeren Gameten, der gewöhnlich an Reservestoffen sehr reich ist, als weiblichen (Ovium ), den kleineren als männlichen (Spermium ). Der größere Gamet kann auch ganz unbeweglich sein (Eizelle). In diesem Falle sucht das Spermium das Ovium auf und befruchtet es (Eibefruchtung, Oogamie). Liegt Oogamie vor, so werden die männlichen und weiblichen Keimzellen in verschieden gestalteten Geschlechtsorganen (männlichen und weiblichen) ausgebildet.
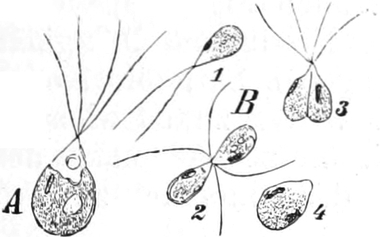
Fig. 227. A Eine ungeschlechtliche Schwärmspore der Grünalge Ulothrix zonata. B 1 ein Gamet, 2 und 3 kopulierende Gameten, 4 eine durch Kopulation erzeugte Zygote. Vergr. 500. Nach STRASBURGER.
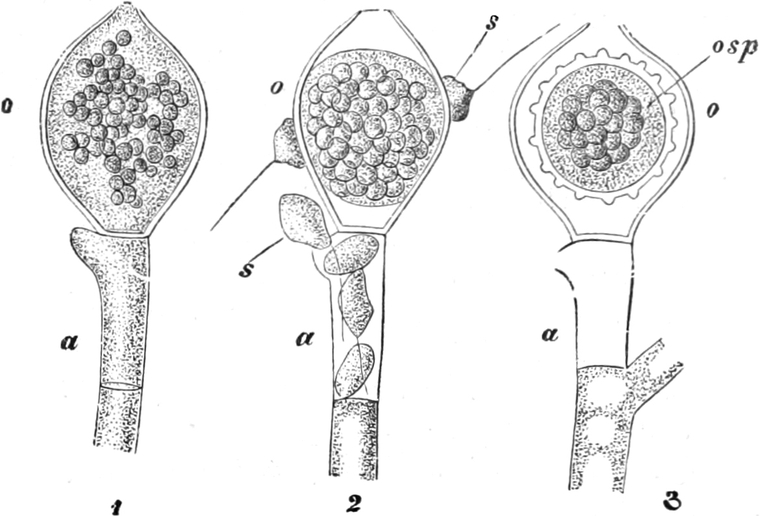
Fig. 228. Monoblepharis sphaerica. Ende eines Fadens mit einem Oogonium o und dem darunter liegenden Antheridium a, in 1 vor der Bildung der Eizelle und der Spermien, in 2 die letzteren s austretend und an dem Oogonium hinaufkriechend, in 3 reife Oospore osp, das Antheridium entleert. Vergr. 800. Nach CORNU.
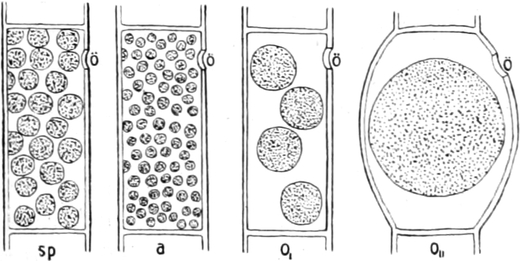
Fig. 229. Schematische Zeichnungen (nach Algen) für Sporangium sp mit Sporen; Antheridium a mit Spermien; Oogonium o′ mit mehreren, o″ mit einer Eizelle. ö Das Loch in der Zellwand.
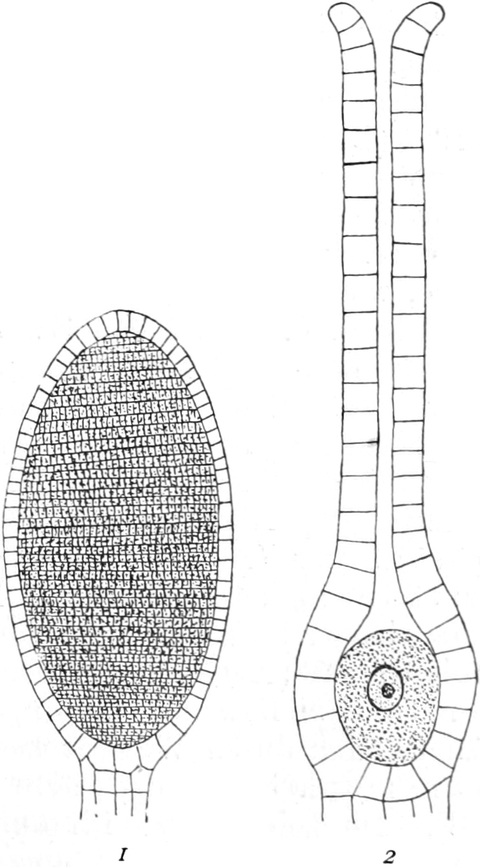
Fig. 230. 1 Antheridium mit steriler, zelliger Wandung und spermatogenem Gewebe; 2 Archegonium mit entsprechender Wandung und Eizelle. Beides von einem Lebermoos.
Die Behälter, in denen die fast stets sehr kleinen und nackten Spermien meist in sehr großer Zahl entstehen, also die männlichen Geschlechtsorgane, werden Antheridien genannt (Fig. 228 2a, 229 a, 230 I). Es sind bei den Thallophyten (Fig. 228 2a, 229 a) meist Einzelzellen, bei den Moosen und Farnpflanzen dagegen Gewebekörper mit einer Wandung aus sterilen Zellen, die das Spermien bildende, spermatogene, Gewebe umschließt (Fig. 230 I). Dagegen heißen die Behälter, in denen die Ovien in Ein- oder Mehrzahl gebildet werden, bei den Thallophyten, wo sie ebenso wie die Antheridien meist Einzelzellen sind, Oogonien (Fig. 228 2 und 229 o′), o″), bei den Moosen und Farnpflanzen, wo sie aus verwickelt gebauten Gewebekörpern bestehen (Fig. 230 2), Archegonien. Die Eizelle, die ebenfalls nackt zu sein pflegt, bleibt gewöhnlich in ihrem Behältnis liegen, in dessen Wand eine Öffnung ausgebildet wird (Fig. 228 2, 229 o′ und o″ ö, 230 2). Die Befruchtung der empfängnisfähig gewordenen Eizellen erfolgt in der Weise, daß die Spermien, die durch ein Loch in der Antheridienwandung in das umgebende Wasser ausschwärmen, also meist aktiv beweglich sind, von den Eizellen durch ausgeschiedene Stoffe chemotaktisch (vgl. S. 292) angelockt werden.
Zahlreiche Übergänge zwischen Oogamie und Isogamie bei den Thallophyten zeigen uns augenscheinlich, daß sich die Oogamie phylogenetisch durch Weiterbildung aus der Isogamie entwickelt hat. Infolgedessen sind bei ihnen die Antheridien und Oogonien einander und zugleich den Gametangien und Sporangien der isogamen Pflanzen homolog (vgl. auch Fig. 229).
Erst durch Aufnahme eines Spermiums hat die Eizelle die Fähigkeit erlangt, sich, nachdem sie sich mit einer Membran umgeben hat, sofort oder nach einer Ruhezeit als Oospore (Fig. 227 3 osp), weiter zu entwickeln. Bei den Moosen und Farnpflanzen geht aus der Eizelle alsbald nach der Befruchtung ein Gewebekörper, der Embryo, hervor, der allmählich zu dem Keimling heranwächst.
Bei den Samenpflanzen entfernen sich die Sexualorgane am weitesten vom einfachsten Typus. Die Gameten sind hier in den Pollenkörnern und Samenanlagen der Blüten eingeschlossen, und zwar enthalten die Pollenkörner die männlichen Sexualzellen, die Samenanlagen in Mehr- oder Einzahl die Eizellen. Hiermit hängt es zusammen, daß sich auch die Befruchtung der Eizellen bei den Samenpflanzen in eigenartiger Weise vollzieht. Sollen die Eizellen befruchtet werden, so müssen die Pollenkörner, die ja die männlichen Keime enthalten, bei den Gymnospermen zunächst auf die Samenanlagen, bei den Angiospermen auf ein besonders ausgebildetes Organ des Fruchtknotens, die Narbe, übertragen werden (Bestäubung). Die meisten und sehr mannigfaltigen Weiterbildungen, die die einfachsten Blüten bis zu den am höchsten organisierten der Angiospermen erfahren haben, sind Anpassungen an die Art der Bestäubung[116]. Diese erfolgt stets durch besondere Transportmittel der Pollenkörner. Wenn, wie sehr häufig, männliche und weibliche Organe in einer Blüte vereinigt sind, d. h. bei den Zwitterblüten, sollte man freilich meinen, daß keinerlei besondere Einrichtungen nötig wären, um den Pollen auf die Narbe zu bringen. Genauere Untersuchung hat aber gezeigt, daß auch hier solche Einrichtungen in Hülle und Fülle bestehen, ja daß sie oft sogar sehr verwickelt sind. Sie alle zielen nicht einfach darauf hin, den Pollen der Blüte auf die zugehörige Narbe zu befördern, sondern machen oft eine derartige Selbstbestäubung (Autogamie) ganz unmöglich und bewirken eine Fremdbestäubung (Allogamie), d. h. eine Übertragung des Pollens auf Narben benachbarter Blüten des gleichen (Geitonogamie) oder womöglich eines anderen Individuums (Xenogamie). Die Übertragung des Blütenstaubes wird, je nach dem Bau der Blüten, durch Wind, durch Tiere oder, in seltenen Fällen, auch durch Wasser besorgt; dementsprechend kann man die Blüten in anemophile, zoidiophile und hydrophile einteilen (vgl. den speziellen Teil). Die zoidiophilen Blüten bilden bunte Blütenblätter, Duft oder Honig aus, wodurch die Bestäubungsvermittler angelockt werden. Die meisten Samenpflanzen haben sich also bei der Befruchtung von der Gegenwart von Wasser ganz frei gemacht; sie konnten zu ausgeprägten Landpflanzen werden.
Neben Pflanzen mit Allogamie fehlt es aber auch nicht an solchen, die Einrichtungen zur Beförderung der Autogamie haben, mag diese erst, wenn die Allogamie nicht geglückt ist, oder, wie bei den kleistogamen Blüten, von vornherein eintreten (vgl. den speziellen Teil).
Nach der Bestäubung treiben die Pollenkörner je eine schlauchförmige Ausstülpung, den Pollenschlauch, der in die Samenanlage bis zur Eizelle vordringt, nachdem er bei den Angiospermen zuvor durch den Griffel in das Fruchtknotengehäuse hinabgewachsen ist (vgl. Fig. 567, 569). Nachdem nun eine offene Verbindung zwischen dem Pollenschlauch und der Eizelle hergestellt ist, wird die Eizelle meist nur durch einen Kern des Pollenschlauches ohne Plasmahülle befruchtet. Die befruchtete Eizelle entwickelt sich in der anschwellenden Samenanlage zu einem vielzelligen Gewebekörper, dem Embryo, der sich schon hier meist in die Keimblätter, das Keimwürzelchen (Radicula) und oft in die Keimknospe (Plumula) gliedert: die Samenanlage aber wird durch Umbildung ihrer Gewebe zum Samen, wobei ihre äußeren Zellschichten die Samenschale liefern. Der Same, der in reifem Zustande abgeworfen wird und zur Vermehrung dient, ist also eine weiterentwickelte Samenanlage, die einen Embryo umschließt. Auch das Fruchtknotengehäuse entwickelt sich nach der Befruchtung der Eizelle weiter, und zwar zur Frucht. Diese kann sich als Ganzes mit den eingeschlossenen Samen von der Mutterpflanze ablösen (so bei den Beeren, Nüssen und Steinfrüchten), oder sie bleibt an der Pflanze sitzen, platzt auf und entläßt die Samen (so bei den Kapseln).
Wie bei allen Fortpflanzungskörpern wird auch bei den Samen und den sich loslösenden Früchten für eine Verbreitung gesorgt[117]. Dies geschieht mit den gleichen Mitteln wie die Pollenübertragung: durch Luft-, durch Wasserströmungen, durch Tiere, sowie endlich auch durch eine Eigentätigkeit der Pflanze. Der Bau der Samen und Früchte ist an ihre Verbreitungsmittel angepaßt (vgl. den speziellen Teil).
Früher oder später nach erfolgter Aussäung beginnt die Samenkeimung[118]. In der Regel tritt am keimenden Samen zunächst die Wurzel des Keimlings aus, indem sie die Samenschale durchbricht. Da diese Schale oft außerordentlich fest gebaut ist, so sind nicht selten besondere Austrittsstellen für die Keimwurzel ausgebildet (z. B. bei der Kokosnuß). Der Keimling wächst zunächst allein auf Kosten von Nährstoffen, die den Samen von der Mutterpflanze in besonderen Speicherorganen mitgegeben worden sind.
Eine sehr eigenartige ungeschlechtliche Fortpflanzung, die sich bei manchen Blütenpflanzen findet, täuscht eine geschlechtliche Fortpflanzung vor. Hier entstehen nämlich innerhalb der Samenanlage an Stelle der unterdrückten Eizelle aus anderen Zellen ungeschlechtliche Embryonen, die also später im Samen eingeschlossen sind[113] (Apogamie). Die Samen enthalten alsdann kein Geschlechtsprodukt, sondern sind zu Organen der vegetativen Vermehrung geworden. Diese „Adventivkeimbildung“ ist in der Regel mit Polyembryonie, d. h. Ausbildung vieler Keime in einem Samen verbunden (Funkia ovata, Citrus aurantium, Caelebogyne ilicifolia u. v. a.).
2. Die Vorgänge der Zellverschmelzung bei der Befruchtung und ihre Folgen. Die Befruchtungsvorgänge selbst, in ihrer einfachsten Form, kann man am besten beobachten bei den Geschlechtszellen niederer Organismen, wo diese Zellen gleich gestaltet sind, also an Isogameten (Fig. 227). Bei solchen Formen läßt sich leicht feststellen, daß nicht bloß die Plasmakörper der beiden Zellen, sondern früher oder später auch ihre Kerne verschmelzen. Dagegen vereinigen sich die Chromatophoren der beiden Geschlechtszellen nicht, wenn in ihnen solche vorhanden sind, was bei manchen Algen (Florideen, Chara u. a.) nicht der Fall ist; entweder leben sie nebeneinander in der befruchteten Zelle fort, oder es geht ein entsprechender Teil zugrunde, falls die Zahl der Chromatophoren in der Zelle konstant ist. Bei den Angiospermen dringt aber, nach unseren jetzigen Kenntnissen, nur ein männlicher Kern (Spermakern) ohne Plasma und ohne Chromatophoren in die Eizelle ein, um hier mit dem Eikern zu verschmelzen. Daraus hat man geschlossen, daß das Wesentliche bei der Befruchtung der Übertritt des männlichen Kernes in die Eizelle ist.
Wir haben bei der typischen Kernteilung gesehen, daß die Kerne eines Individuums stets eine konstante, für die Art bezeichnende Chromosomenzahl behalten. So bringt die männliche Zelle meist ebensoviele Chromosomen wie die weibliche mit. Diese Chromosomen verschmelzen bei der Kopulation der Geschlechtszellkerne nicht, so daß der Kopulationskern die doppelte Chromosomenzahl besitzt wie die Kerne der Geschlechtszellen[119]. Er ist diploid gegenüber den haploiden Kernen dieser Zellen.
Auch die Kerne, die durch Teilung aus dem Kopulationskerne hervorgehen, sind meist diploid. In jedem diploiden Kerne stammen meist ebensoviele Chromosomen von dem männlichen wie vom weiblichen Kerne. Kommen in den haploiden Kernen zwischen den einzelnen Chromosomen Größen- und Formunterschiede vor, die bei jeder Kernteilung wieder sichtbar werden, so sind die Chromosomen in den diploiden Kernen paarweise gleich groß und gleich gestaltet. Diese paarweise gleichen Chromosomen, von denen immer eines von dem Vater, das andere von der Mutter stammt, liegen in den Kernplatten meist nebeneinander (Fig. 14).
Da die Kerne der Geschlechtszellen aller Individuen einer Rasse stets haploid, die Kopulationskerne aber und meist auch ihre Teilungsprodukte diploid sind, so müssen irgendwo im Entwicklungsgange des Individuums aus den diploiden Kernen wieder haploide werden; sonst müßte ja von Generation zu Generation die Zahl der Chromosomen sich verdoppeln! Dieser Vorgang vollzieht sich in der Reduktionsteilung[120], d. h. einer eigenartigen Kernteilung, wobei nicht die Längshälften der Chromosomen, sondern die ganzen Chromosomen zur Hälfte auf die beiden Tochterkerne gleichmäßig verteilt werden. Sie tritt im Entwicklungsverlaufe an ganz bestimmter Stelle ein, die bei verschiedenen Organismen freilich recht verschieden sein kann. So ist für den Entwicklungsgang sexueller Organismen ein regelmäßiger Wechsel von Haploidie und Diploidie der Kerne (ein Kernphasenwechsel) bezeichnend.
Bei vielen Algen ist aber gleich die erste Teilung des befruchteten Eikernes die Reduktionsteilung, so daß alle Zellen des Organismus, also auch seine Geschlechtszellen, mit Ausnahme der befruchteten Eizelle, haploid sind. Bei anderen (z. B. bei Fucus) erfolgt die Reduktion erst bei Bildung der Geschlechtszellen, so daß umgekehrt alle Zellen des Körpers mit Ausnahme der Geschlechtszellen diploide Kerne haben. Oft ist aber der Kernphasenwechsel mit einem Generationswechsel verbunden (vgl. S. 175).
Bei manchen Pflanzen wird indes der Reduktionsvorgang aus dem Entwicklungsgange dadurch ausgeschaltet, daß sie diploide Eizellen bilden[112], [113]. Ein solches Ei, das somit bereits über die doppelte, sonst erst durch die Befruchtung geschaffene Zahl von Chromosomen verfügt, entwickelt sich ohne Befruchtung, also parthenogenetisch weiter. So ist es bei den S. 165 genannten unbefruchteten Eizellen der Samenpflanzen, Marsiliaceen und von Chara, während bei anderen Algen die haploide Eizelle parthenogenetisch sich zu einer neuen Pflanze entwickeln kann. Erwähnt sei hier, daß man vielfach dann nicht von Parthenogenesis, sondern von Apogamie (vgl. S. 171) spricht, wenn diploide und nicht mehr befruchtungsfähige Geschlechtszellen, also ohne Befruchtung, sich weiter entwickeln.
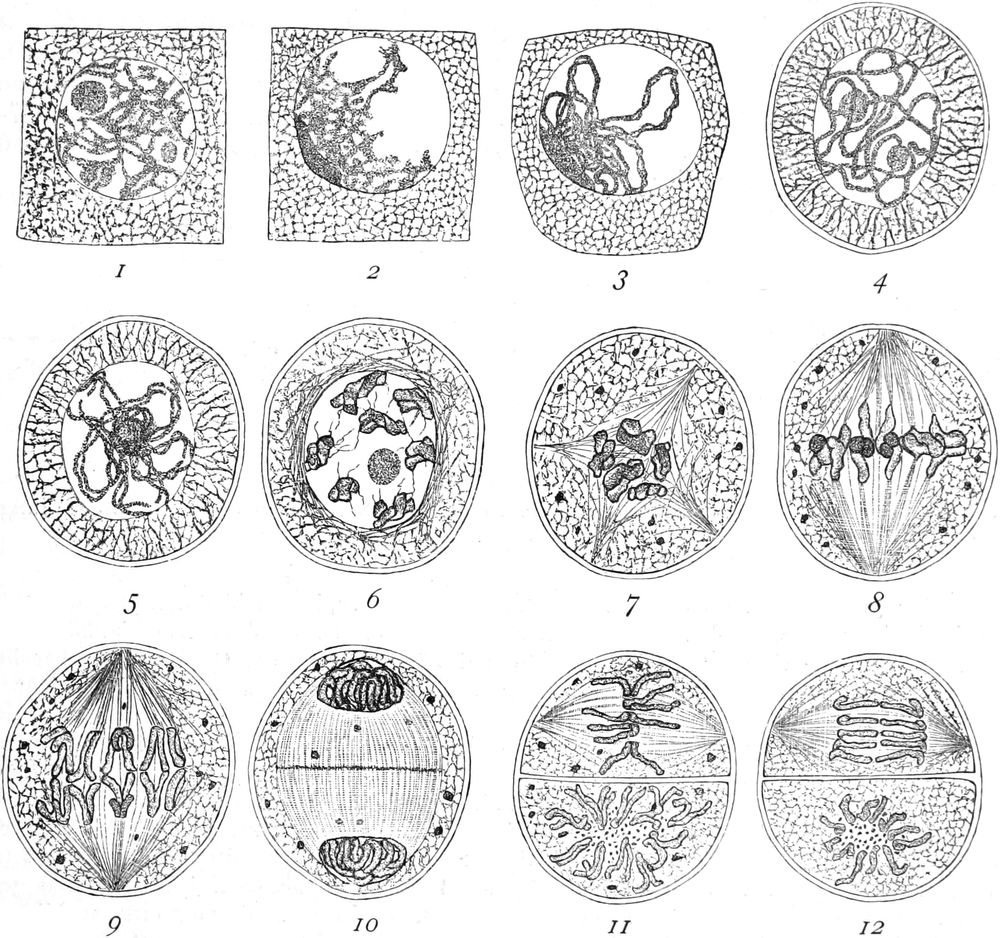
Fig. 231. Pollenmutterzellen einer Lilie in Teilung, etwas schematisiert. Nach Fixierung mit Chromosmiumessigsäure und Eisenhämatoxylinfärbung. Die Chromatophoren nach solcher Fixierung und Färbung nicht sichtbar. Erklärung im Text. Nach STRASBURGER.
Eigentümlich ist es für die Reduktionsteilung, die man im Gegensatze zu der gewöhnlichen Mitose oder typischen Teilung auch heterotypische Teilung oder Meiosis nennt, daß der Kerninhalt in der Prophase, und zwar im Spiremstadium vorübergehend einseitig zusammengeballt ist (Synapsis, Fig. 231, 2, 3). Besonders bezeichnend für den weiteren Verlauf der Teilung ist aber, daß sich die väterlichen und mütterlichen Chromosomen paarweise fest, zu den Gemini, aneinanderlegen oder gar vorübergehend vereinigen. Die Zahl dieser Gemini, in denen die Chromosomen auffällig kurz und dick werden, ist natürlich halb so groß wie die Zahl der Chromosomen in den Gewebezellen derselben Pflanze. In dem Zustand der sog. Diakinese (5, 6), der auf die Synapsis folgt, sind die Gemini annähernd gleichmäßig an der Kernwand verteilt. Nun beginnen Plasmafäden sich von außen der Kernwandung anzuschmiegen (6), worauf die Kernwandung schwindet und aus den Plasmafäden die Anlage der Kernspindel hervorgeht, die zunächst mehrpolig ist (7), allmählig aber zweipolig (8) wird. Die Gemini werden nun zu einer äquatorialen Kernplatte angeordnet (8). Bald erfolgt hier die Trennung der zu Paaren vereinigten Chromosomen (9). Bei dieser Trennung werden somit nicht Längshälften von Chromosomen, sondern ganze Chromosomen voneinander geschieden, die zur Hälfte dem einen, zur Hälfte dem anderen Tochterkern zugeteilt werden. Das hat zur Folge, daß die Zahl der Chromosomen, die jedem Tochterkern zufällt, nur die Hälfte jener Zahl ist, die die Gewebezellen derselben Pflanze in ihren Kernen enthalten, und daß beide Tochterkerne teils männliche, teils weibliche Chromosomen bekommen: Da sich bei der Bildung der Gemini in der Reduktionsteilung immer gleichgestaltete Chromosomen aneinanderlegen, von denen eines dem Vater, das andere der Mutter entstammt, und da bei dieser Teilung die Chromosomen sich voneinander trennen, um regellos in die beiden Tochterkerne einzugehen, so muß jeder dieser haploiden Tochterkerne einige Chromosomen vom Vater, die übrigen von der Mutter erben. Welche vom einen, welche vom anderen Elter stammen, darüber scheint der Zufall zu entscheiden. Die Bildung der Tochterkerne vollzieht sich wie bei einer gewöhnlichen Kernteilung (10). Rasch folgt aber auf die Reduktionsteilung meist eine zweite Teilung, die homöotypische Teilung, die im wesentlichen typisch verläuft (11, 12). In der homöotypischen Teilung trennen sich also Längshälften von Chromosomen wie in der typischen Teilung voneinander. Ein Unterschied gegenüber der letzteren besteht aber darin, daß die Chromosomen nicht in der Prophase dieser Teilung längs gespalten werden, sondern, wie es scheint, bereits in der Prophase der vorausgegangenen Reduktionsteilung, freilich ohne daß die gebildeten Hälften getrennt werden. So bilden zwei schnell aufeinanderfolgende Kernteilungen, die hetero- und die homöotypische, ein bezeichnendes Merkmal der meisten Reduktionsvorgänge.
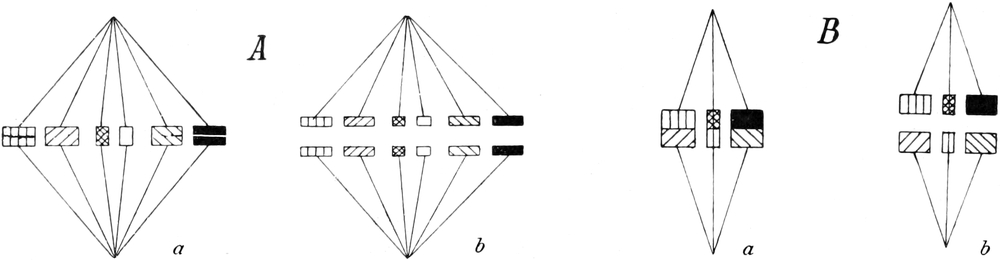
Fig. 232. In A schematische Darstellung der Äquationsteilung, in B der Reduktionsteilung. Nach STRASBURGER.
Der grundsätzliche Gegensatz, der zwischen der typischen Teilung und der Reduktionsteilung besteht, soll auch schematisch deutlich gemacht werden. Die Fig. 232 stellt in A eine typische Kernteilung dar, die also auf Längsspaltung der Chromosomen beruht. Es sind sechs längsgespaltene, zur Kernplatte angeordnete Chromosomen eingezeichnet und durch verschiedene Schraffierung kenntlich gemacht. Die zwei mittleren sind in Frontansicht, die vier anderen in Seitenansicht gezeichnet. In Ab sieht man die getrennten Längshälften dieser Chromosomen auf ihrem Wege nach den Spindelpolen begriffen. Fig. 232 B ist dagegen ein Schema der Reduktionsteilung. Die sechs in entsprechender Weise wie in Fig. 231 A gekennzeichneten Chromosomen sind in Ba zu drei Gemini vereinigt. Die beiden seitlichen Gemini sind in Seitenansicht, der mittlere Geminus ist in Frontansicht gezeichnet. In Bb haben sich die beiden Chromosomen jedes Geminus getrennt. Sie werden nach den Spindelpolen geschafft, um hier die Tochterkerne zu bilden. Diese Teilung ist mit einer Reduktion der Chromosomenzahl von sechs auf drei in den beiden Tochterkernen verbunden. Im Gegensatz zu der Reduktionsteilung, die eine Verschiedenheit der Teilungsprodukte bedingt, weil sie ganze, untereinander verschiedene Chromosomen trennt, wird die typische Kernteilung wohl auch als Äquationsteilung bezeichnet, da sie in den Längshälften der Chromosomen völlig übereinstimmende Teilungsprodukte liefert.
Über die Fragen, wann und wie die Chromosomen bei der Reduktionsteilung sich zu Paaren aneinanderlegen oder auch vorübergehend zu einheitlichen Gebilden vereinigen, sind die Ansichten noch geteilt. Möglicherweise erfolgt die Reduktionsteilung überhaupt nicht nach einem einheitlichen Schema. Meist scheinen sich die Chromosomen dabei paarweise nebeneinander (Parasyndese), bei manchen Pflanzen dagegen mit den Enden aneinander zu legen (Metasyndese).
Bei der Wiedertrennung der paarweise miteinander verkoppelten Chromosomen scheint ein Austausch von Chromosomensubstanz zwischen den Paarlingen möglich zu sein[121].
D. Generationswechsel[122]. Mit der Fortpflanzung ist bei den Pflanzen meist ein Generationswechsel, d. h. im typischen Falle ein regelmäßiger Wechsel mindestens zweier, durch ihre Fortpflanzungsweise voneinander verschiedener Generationen verbunden, die häufig morphologisch ganz verschiedene und selbständige Individuen sind. Der Entwicklungsgang eines solchen Gewächses setzt sich alsdann meist aus zweierlei Individuen zusammen, die in regelmäßigem Wechsel aufeinanderfolgen, häufig äußerlich und innerlich ganz verschieden gebaut sind und verschiedene Fortpflanzungsorgane erzeugen. Die eine Generation pflanzt sich nur vegetativ fort, man nennt sie Sporophyt; die andere, der Gametophyt, auch sexuell. Als typisches Beispiel für einen solchen Generationswechsel sei der Entwicklungsgang der Farnpflanze erwähnt: Das beblätterte Farnkraut erzeugt nur ungeschlechtliche Sporen in Sporangien, ist also der Sporophyt. Die Sporen werden ausgestreut und keimen nicht zu einem neuen beblätterten Farn, sondern zu einem kleinen, thallösen Gebilde aus, dem Prothallium (Fig. 97), das die Antheridien und Archegonien ausbildet und sich sexuell fortpflanzt, also der Gametophyt ist. Erst die befruchtete Eizelle wird wieder zu einer beblätterten Farnpflanze. Jede der genannten Fortpflanzungszellen der einen Generation erzeugt also nur die andere Generation; so folgen Sporophyt und Gametophyt (desgleichen ungeschlechtliche und geschlechtliche Fortpflanzung) in regelmäßigem Wechsel aufeinander. Sporophyt und Gametophyt können aber auch gleichen Bau besitzen (z. B. bei der Braunalge Dictyota).
Sehr häufig kommt es vor, daß nicht beide Generationen selbständige Individuen sind, sondern daß die eine dauernd mit der anderen, wie ein Schmarotzer mit seinem Wirt, verbunden bleibt. In diesem Falle läßt sich erst durch genaue Untersuchung feststellen, daß ein Generationswechsel vorhanden ist. So ist es bei den Moosen und bei den Samenpflanzen. Bei den Moosen ist nämlich das Moospflänzchen die geschlechtliche Generation, der Gametophyt, der die Antheridien und Archegonien erzeugt; die gestielte Mooskapsel, die mit der Moospflanze dauernd verbunden bleibt, ist dagegen eine Generation für sich, der Sporophyt, also nicht, wie es den Anschein hat, ein Glied der Moospflanze. Bei den Samenpflanzen ist die beblätterte Pflanze wie die Farnpflanze ein Sporen erzeugender Sporophyt; aus den Sporen gehen stark reduzierte männliche und weibliche Prothallien hervor, von denen die ersteren in die Pollenkörner und Pollenschläuche, die letzteren dauernd in die Samenanlagen der Blüten eingeschlossen bleiben.
Wo ein Generationswechsel im Pflanzenreich vorkommt, pflegt mit ihm der Kernphasenwechsel verbunden zu sein, so bei vielen Algen, Pilzen, den Moosen, Farn- und Samenpflanzen. Der aus der befruchteten Eizelle entstandene Sporophyt ist diploid; der Bildung seiner Sporen geht die Reduktionsteilung unmittelbar voraus; infolgedessen sind die Sporen selbst, der daraus sich entwickelnde Gametophyt und seine Geschlechtszellen haploid. Dementsprechend ist z. B. die beblätterte Generation der Farn- und Samenpflanzen ebenso wie die Mooskapsel diploid; das Moospflänzchen, das Farnprothallium und die reduzierten Prothallien der Samenpflanzen sind dagegen haploid.
Sehr merkwürdig sind einige Fälle, wo aus vegetativen Zellen der einen Generation ohne weiteres sich die andere, dann also mit gleicher Chromosomenzahl entwickeln kann. Bei einer Form von Athyrium filix femina geht aus solchen vegetativen Prothallienzellen, deren Kerne diploid sind, ohne Verschmelzung die diploide Farnpflanze hervor, die unter Ausschaltung der Sporen und der Reduktionsteilung aus ebenfalls diploiden Zellen des Blattrandes wieder diploide Prothallien erzeugt (Aposporie). Nach YAMANOUCHI kann aber auch (bei Nephrodium molle) aus einer haploiden Prothallialzelle ohne Verschmelzungsvorgänge eine haploide Farnpflanze entstehen. Ferner kann man auf experimentellem Wege durch Regeneration aus zerschnittenen Mooskapselstielen, die als Sporophytengewebe diploid sind, eine diploide Moospflanze, also einen diploiden Gametophyten erziehen, der auch diploide und gleichwohl befruchtungsfähige Geschlechtszellen hervorbringt. Durch Befruchtung entstehen tetraploide Mooskapseln, die wiederum auf dem Wege der Regeneration selbst tetraploide Moospflanzen liefern können. Eine direkte Beziehung zwischen der Chromosomenzahl und der Ausbildung der Generation besteht also offenbar nicht[112], [113].
Vierter Abschnitt. Die Deszendenzlehre und die Entstehung der Anpassungen.
A. Die Deszendenztheorie[123]. Eine der allerwichtigsten theoretischen Fragen der Morphologie ist die, wie die organischen Formen unserer Erde und ihre morphologischen Baueigentümlichkeiten entstanden sind. Die frühere Annahme, die Einzelarten seien selbständig und unabhängig voneinander erschaffen worden (Schöpfungstheorie), ist allmählich, namentlich infolge der Vertiefung unserer morphologischen Kenntnisse und unter dem Einflusse der Werke DARWINs, durch die Deszendenztheorie völlig verdrängt worden, wie schon in der Einleitung hervorgehoben wurde; d. h. durch die Vorstellung, daß die Organismen, die jetzt die Erde bewohnen, aus anderen und oft einfacher gebauten sich entwickelt haben, die in früheren Erdepochen gelebt haben (vgl. S. 1 ff.). Die Deszendenz- oder Abstammungslehre durchdringt heute als eine grundlegende Theorie der Biologie die morphologische Forschung in allen ihren Teilen so vollständig, daß es für den Morphologen unerläßlich ist, sich mit den zahlreichen Indizienbeweisen vertraut zu machen, wodurch sie uns geradezu aufgezwungen wird. Solche Beweise liefert vor allem die Systematik, die Morphologie, die Pflanzen- und Tiergeographie und die Paläontologie.
1. Systematische Beweise. Nach der Schöpfungstheorie sind die Arten unabhängig voneinander erschaffen worden und im wesentlichen konstante, d. h. nur so wenig veränderliche Gebilde, daß aus einer Art nicht andere Arten, sondern höchstens Varietäten als mehr oder weniger erbliche Abänderungen hervorgehen können. Diese Lehre fordert also scharfe Grenzen zwischen den Spezies und deutliche Unterschiede im Wesen der Arten und in dem der Varietäten. Dem Systematiker, der sich in das Studium irgendwelcher Lebewesen vertieft, fällt es aber immer wieder auf, daß sich überhaupt keine Merkmale auffinden lassen, wodurch sich Varietäten durchgreifend von Arten unterscheiden. Das Maß der morphologischen Verschiedenheiten zwischen den Arten einer Gattung, den Varietäten einer Art oder zwischen Arten und Varietäten ist eben ganz und gar unbestimmt. Auch hat sich im Laufe der Zeit gezeigt, daß die Arten gar keine selbständigen morphologischen Einheiten sind, sondern in vielen Fällen sehr umfangreiche Formenkreise von „Kleinarten“ (z. B. in den Gattungen Erophila, Rubus, Rosa, Hieracium, Quercus), deren scharfe Abgrenzung gegen andere Arten, d. h. andere solche Formenkreise, zudem oft sehr schwierig, ja manchmal kaum möglich ist. Auch sind die erblich konstanten Kleinarten oft viel weniger voneinander verschieden als viele sog. Varietäten. So ist es oft lediglich Sache des Geschmackes, des „systematischen Taktes“, ob man eine Form als Art oder Varietät auffassen und wie man eine Art umgrenzen will. Denn auch die Regel, an die man früher wohl glaubte, die Kreuzungen zwischen den unabhängig voneinander erschaffenen Arten seien unfruchtbar, zwischen den Varietäten einer Art aber fruchtbar, hat sich als nicht richtig erwiesen; es gibt fruchtbare und unfruchtbare Bastarde zwischen zwei Varietäten und zwischen zwei Arten. Aber nicht nur Übergänge zwischen Arten kommen vor, sondern oft selbst zwischen Gattungen oder gar Familien, so daß es manchmal auch hier der Willkür des Systematikers überlassen bleibt, die Grenzen zu ziehen. Alle diese Tatsachen werden nur verständlich, wenn man annimmt, daß die Arten nicht selbständig erschaffen, sondern erblich veränderlich sind, d. h. daß aus einer Spezies durch erbliche Umwandlungen andere hervorgehen können, durch stärkere Veränderungen aus den Arten einer Gattung neue Gattungen, schließlich aus einer Familie andere Familien. Ohne diese Annahme bleibt es auch völlig unbegreiflich, daß es möglich ist, die Organismen überhaupt in Gruppen niederer und höherer Ordnung (Arten, Gattungen, Familien, Klassen usw.) zu bringen, die sich teils einander koordinieren (wie die Arten einer Gattung, die Gattungen einer Familie), teils einander subordinieren lassen (wie die Gattungen der Familie, die Arten der Gattung), und daß die Gruppen der ausgestorbenen Organismen, die in früheren Erdepochen lebten, zwischen die der lebenden meist zwanglos eingeordnet werden können. Alle Schwierigkeiten fallen sofort weg, wenn man die Organismen als blutsverwandt betrachtet und das natürliche System als den Ausdruck der näheren und ferneren Verwandtschaft, also gewissermaßen als eine genealogische Anordnung (Stammbaum) der Lebewesen ansieht.
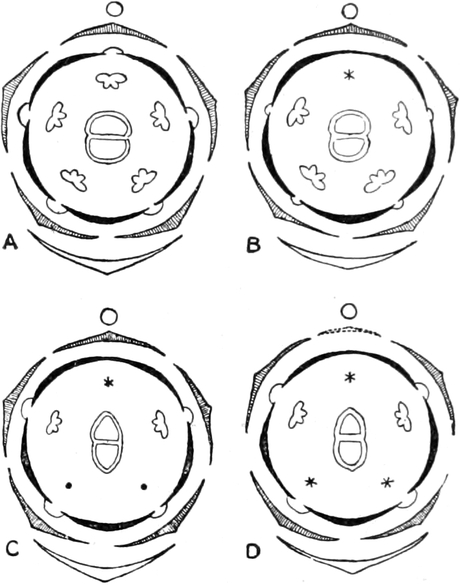
Fig. 233. Blütendiagramme von Scrophulariaceen. A Verbascum nigrum, B Digitalis purpurea, C Gratiola officinalis, D Veronica Chamaedrys. A, C, D nach EICHLER. Die unfruchtbaren Staubgefäße sind durch schwarze Punkte, vollständig geschwundene durch Sterne angedeutet.
2. Morphologische Beweise. Unverständlich für die Schöpfungstheorie, sofort einleuchtend bei Annahme der Deszendenzlehre sind ferner einerseits die gemeinsamen, morphologischen Baupläne, die den Angehörigen einer systematischen Gruppe, einer Gattung, einer Familie, einer Klasse, in gewissem Sinne sogar allen Organismen der Erde (im zelligen Bau, Protoplasma) zugrunde liegen, andererseits das Vorkommen von einzelnen Eigenschaften bei einer Gruppe, bei der man sie nach ihrem Bauplan eigentlich gar nicht erwarten sollte (z. B. die Spermien im Pollenschlauch der Zykadeen). Die großen Gruppen der Moose, Farne und Gymnospermen haben bei allen morphologischen Verschiedenheiten doch im wesentlichen den gleichen Entwicklungsgang, den gleichen Generationswechsel und die gleichen Geschlechtsorgane. Nur mit der Annahme der Blutsverwandtschaft kann man ferner verstehen, daß so oft die Organe verschiedener Arten bei genauerer morphologischer Untersuchung trotz gleichem Bau und gleichen Funktionen doch verschiedenen Grundformen entsprechen, also nur analog sind, daß sie umgekehrt aber auch dann einander homolog gefunden werden, wenn sie völlig verschieden gebaut sind und ganz verschiedenen Funktionen dienen, oder daß auch die Organe eines und desselben Organismus trotz ganz verschiedenem Bau und verschiedenen Funktionen doch so oft homolog sind. Dornen und Ranken z. B. sind „umgewandelte“ Blätter, Nebenblätter, Sproßachsen oder Wurzeln; die Keimblätter, Nieder-, Hoch-, Kelch-, Kronblätter, die Staubgefäße und die Fruchtblätter einer Pflanze sind sämtlich nichts anderes als „umgewandelte“ Laubblätter. Alle diese Umwandlungen und Weiterbildungen von Organen haben offenbar während der phylogenetischen Entwicklung stattgefunden. Ebenso weisen die funktionslos gewordenen, reduzierten Organe, die man bei manchen Formen findet, auf die Abstammung von solchen Formen hin, bei denen die Organe noch wohl ausgebildet waren: In der Familie der Scrophulariaceen (Fig. 233) finden wir Formen mit fünf Staubgefäßen bei Verbascum bis zu solchen mit nur zwei halben bei Calceolaria; in der Gattung Scrophularia ist eines der fünf zwar noch vorhanden, aber reduziert; bei Digitalis fehlt das reduzierte; bei Gratiola sind nur zwei fruchtbare vorhanden, außerdem noch zwei reduzierte, bei Veronica nur zwei fruchtbare, bei Calceolaria nur zwei halbe. Reduzierte, nutzlose Organe sind aber für die Schöpfungstheorie schwer verständlich. Gelegentlich beobachtet man wohl auch, daß bei einer Form plötzlich eine fremdartige Eigenschaft auftaucht, die man nur als einen Rückschlag (Atavismus) zu längst verloren gegangenen Eigenschaften von Vorfahren auffassen kann, z. B. Fruchtbarwerden reduzierter Staubgefäße, Auftreten von reduzierten oder fruchtbaren Staubgefäßen an Stellen, wo solche in der phylogenetischen Entwicklung verloren gegangen waren. Auf eine Blutsverwandtschaft der Organismen deutet ferner die weitgehende Ähnlichkeit der Embryonen selbst sehr verschiedener Organismen hin, wofür namentlich das Tierreich viele auffallende Beispiele liefert; weiter die Tatsache, daß manchmal die Embryonen viel höher gegliedert sind als die ausgebildeten Organismen (so bei manchen reduzierten Organismen, z. B. vielen Parasiten), und daß die Jugendblätter an den Keimlingen mancher Gewächse, die an extreme Lebensbedingungen einseitig angepaßt sind, den Folgeblättern nicht so einseitig angepaßter Arten der gleichen Gattung entsprechen (z. B. bei Acacia, vgl. Fig. 140). Ja nicht selten wiederholt eine Art mehr oder weniger in ihrer ontogenetischen Entwicklung die Entwicklung, die man aus sonstigen Gründen als ihre phylogenetische ansehen muß (biogenetisches Grundgesetz).
3. Geographische Beweise. Geographische Schranken, Hindernisse für freie Wanderung (wie z. B. hohe Gebirge, Meere für Landpflanzen oder Ländermassen für Meeresorganismen) stehen mit den Verschiedenheiten der Flora und Fauna der einzelnen Wohngebiete, Länder, Kontinente und Meere in auffälligem Zusammenhang. Die Organismenwelten zweier Kontinente sind durchschnittlich in Familien, Gattungen usw. um so verschiedener, je schwieriger die Verbindungen sind und früher waren, weil die Formen in einem jeden solchen Land sich selbständig phylogenetisch weiter entwickelten. Zwei Gebiete haben dagegen um so mehr gemeinsame Formen, je leichter ein Formenaustausch möglich war. Sehr allgemeine Regel ist, daß die Bewohner eines Gebietes mit denen desjenigen nächsten Gebietes am engsten verwandt sind, aus dem sich die Einwanderung aus geologischen und geographischen Gründen mit Wahrscheinlichkeit annehmen läßt. Das gilt z. B. für die Kap Verdischen Inseln und das afrikanische Festland, für die Galapagosinseln oder Juan Fernandez und die Nachbargebiete von Amerika. Je abgeschlossener aber ein Wohnbezirk, etwa eine Insel, von der übrigen Welt ist, um so reicher pflegt sie an ihm eigentümlichen Formen, Endemismen, zu sein. Das sind teils solche Formen, die sich von anderen nicht endemischen oft nur wenig unterscheiden und offenbar aus ihnen in solchen Gebieten erst nach deren Abschließung entstanden sind, ohne sich darüber hinaus haben ausbreiten zu können (progressive Endemismen), teils auch solche, die als Reste früher weiter verbreiteter Formen in dem Gebiet ohne Verwandte sind, vielfach als Zeugen untergegangener Floren angesehen werden können und in diesem Falle hohes Alter aufweisen (Reliktendemismen).
4. Paläontologische Beweise. Die Paläontologie endlich zeigt uns, daß Arten in der Geschichte unseres Planeten völlig erlöschen, andere dafür auftauchen, ferner daß nicht selten in benachbarten Erdschichten die Formen sich zu Formenreihen fortschreitender Organisationshöhe anordnen lassen, und daß die Formengruppen, deren Arten wir als die am reichsten gegliederten ansehen, erst verhältnismäßig spät in der Erdgeschichte, die Angiospermen z. B. erst in der Kreidezeit, erschienen sind. Vor allem aber hat diese Wissenschaft uns heute fehlende, ausgestorbene Zwischenglieder zwischen Gattungen, Familien und Klassen kennen gelehrt, d. h. Formen, die in ihren Baueigentümlichkeiten zwischen diesen vermitteln. Daß sie nicht häufiger sind, hängt offenbar mit der großen Unvollständigkeit unserer geologischen Urkunden zusammen. Auf botanischem Gebiete ist die wichtigste dieser Zwischengruppen die der Pteridospermeen oder Cycadofilices. Das sind Gewächse der Karbonformation, die zwischen Farnen und Zykadeen vermitteln, d. h. Blätter wie Farne, Samen aber wie die Zykadeen und anatomischen Bau teils wie jene, teils wie diese gehabt haben.
5. Direkte Beweise für die Veränderlichkeit der Arten. Alle diese verschiedenartigen Indizienbeweise gewinnen aber noch dadurch ganz wesentlich an Bedeutung, daß es gelungen ist, die Inkonstanz mancher Arten direkt zu beobachten. Bei sorgfältiger Untersuchung sehen wir nämlich in der freien Natur, viel häufiger aber in der Kultur, bei Organismen gelegentlich erbliche Veränderungen auftreten, die den systematischen Wert von Varietäten oder Arten haben. Auch ist es im Experimente auf verschiedenen Wegen geglückt, solche erblich konstanten Veränderungen, also die Erzeugung neuer Formen zu erzwingen. Derartige Beobachtungen sind zugleich deshalb sehr wertvoll, weil sie uns Einblicke in das Problem der Artbildung, der Entstehung neuer morphologischer Eigenschaften erlauben.
B. Entstehung der Anpassungen. Alle bisherigen Beobachtungen weisen darauf hin, daß die erblichen Änderungen der Organismen bald diese, bald jene Eigenschaften betreffen und in kleineren oder wohl auch größeren Sprüngen, und zwar ganz regellos erfolgen. Daraus erklärt sich die große Mannigfaltigkeit der organischen Formen. Diese sprunghaften Veränderungen können bald schädlich, bald gleichgültig, bald nützlich für den Organismus sein. Sind sie so schädlich, daß der Organismus damit nicht mehr lebensfähig ist, so verschwinden derartige Varianten meist ebenso schnell, wie sie entstanden sind (z. B. Keimlinge, die die Eigenschaft verloren haben, Chlorophyll auszubilden). Wieweit solche erblichen Veränderungen unter dem Einflusse äußerer erfaßbarer Bedingungen entstehen, bleibt im einzelnen noch zu erforschen.
Seitdem man sich auf den Boden der Deszendenzlehre gestellt hat, hat man erkannt, daß eine besondere Erklärung noch die Entstehung der für die Organismen so bezeichnenden Anpassungsmerkmale bedarf. Mit der Erkenntnis, daß die Lebewesen regellos erblich abändern, ist ja noch keinerlei Einsicht in die auffällige Tatsache gewonnen, daß der Organismus vielfach so ausgesprochen an seine Umwelt, ferner ein Organ in seinem Bau mehr oder weniger an seine Funktionen angepaßt ist und nützlich reagiert. Dieser Zustand der Anpassung, dieses erbliche Angepaßtsein muß phylogenetisch irgendwie entstanden sein; wie, darauf geben uns alle Beobachtungen und Versuche bis jetzt keine unmittelbare Antwort. Erklärungen hat man auf ganz verschiedenem Wege versucht. Die wichtigsten Hypothesen in dieser Hinsicht sind der Lamarckismus und der Darwinismus.
1. Der Lamarckismus[124] geht von der Tatsache aus, daß manche Organismen je nach der Umgebung, in der ihre Keimzellen auskeimen und sich zum fertigen Organismus entwickeln, verschiedene Gestalt annehmen, ohne daß diese Lebewesen dadurch die Fähigkeit verlören, sich in anderer Umgebung dieser entsprechend zu entwickeln. So gibt es Pflanzen, die sowohl auf dem Lande wie im Wasser leben können (man nennt sie amphibische) und die je nach den Außenbedingungen, in denen sie sich entwickeln, verschiedene Formen annehmen. Auf dem Lande ausgesät, nehmen sie Gestalt und inneren Bau typischer Landpflanzen an; bei Kultur im Wasser gleichen sie typischen Wasserpflanzen. Manche Pflanzen bilden bei Trockenkultur xerophile Merkmale aus, bei Kultur in feuchter Luft dagegen hygrophile. Diese Befähigung, in verschiedener Umgebung mit Ausbildung verschiedener Merkmale zu reagieren, nennt man Modifikationsfähigkeit. Solche Modifikationen (vgl. Physiologie S. 285) sind nicht in dem Sinne erblich, daß die Samen z. B. einer amphibischen Pflanze, die sich im Wasser zur Wasserpflanze entwickelt hat, bei Aussaat auf dem Lande nun ebenfalls die Wasserform lieferte. Vielmehr entsteht auf dem Lande immer die Land-, im Wasser stets die Wasserform, von welcher Form auch immer die Samen entnommen sein mögen.
Man hat nun in diesen Wirkungen der Außenwelt auf solche modifizierbaren Pflanzen ein direktes „Sichanpassen“ erblicken wollen und dem Organismus die Fähigkeit zugeschrieben, auf jede äußere Einwirkung, auch auf solche, die ihm in der Natur nicht zu begegnen pflegen, mit einer nützlichen Reaktion zu antworten. So wie an äußere Faktoren, so soll auch ein Sichanpassen an neue Funktionen möglich sein; jedes „Bedürfnis“ nach einem Organ soll auf die Bildung eines solchen hinwirken. Und weiter nimmt der Lamarckismus an, daß jede einmal entstandene Veränderung, insbesondere jede durch Außenfaktoren oder durch „Bedürfnisse“ bewirkte Abänderung auch erblich sei oder zum mindesten mit der Zeit erblich werden könne. Wenn also eine Pflanze Generationen hindurch sich immer wieder an das Wasserleben oder an das Leben im Schatten oder Leben auf Kosten eines anderen Organismus im obigen Sinne direkt anpaßt, so sollen die so gewonnenen Baueigentümlichkeiten allmählich fixiert werden; d. h. sie sollen auch dann auftreten, wenn die Anlässe dazu nicht mehr vorhanden sind. Zu dieser Auffassung ist zunächst zu bemerken, daß die Annahme, „ein Bedürfnis nach einem Organ könne die Bildung eines solchen bewirken“, eine unklare Überlegung ist. Sodann muß man betonen, daß von einem Erblichwerden solcher Wirkungen äußerer Bedingungen, die wir Modifikationen genannt haben, schlechterdings nichts zu bemerken ist. Schon aus diesem Grunde ist der Lamarckismus abzuweisen. Zweitens aber hieße es an ein Wunder glauben, wenn man annehmen wollte, daß der Organismus von vornherein auf beliebige Außenfaktoren nützlich reagierte. In der Tat sehen wir auch nicht ganz selten Reaktionen auf neue ungewohnte Reize eintreten, die durchaus „gleichgültig“ oder gar schädlich erscheinen. So krümmen sich Droseratentakeln auf hohe Temperatur hin so ein, als wären sie mit einem Insekt in Berührung gekommen; abgeschnittene Blätter können bei vielen Pflanzen durch Ausbildung von Wurzeln sich manchmal jahrelang am Leben erhalten, auch wenn ihnen die Möglichkeit der Sproßbildung abgeht. Wenn andererseits auf verschiedene Reize, denen gewisse Organismen an ihren verschiedenen Standorten ausgesetzt sind, wie Wasser, Luft, Licht, Schatten usw., ein direktes Sichanpassen zu folgen scheint, so kann man diese Erfolge auch anders deuten. Man kann annehmen, daß solche Organismen schon die Befähigung, d. h. die Anlagen besitzen, die ihnen je nach den äußeren Bedingungen bald diese, bald jene Entwicklung einzuschlagen erlauben. Die Außenfaktoren erzeugen also nicht solche Befähigungen oder Anlagen, sondern sie bewirken nur ihre Entfaltung oder Nichtentfaltung. Wie aber jene Anlagen historisch entstanden sind, warum manche Lebewesen sie besitzen, andere nicht, warum also z. B. nur manche angepaßt sind, im Wasser in der Gestalt von Wasserpflanzen, auf dem Lande in der Gestalt von Landpflanzen zu leben, das eben bleibt wie eine jede andere Anpassung noch immer zu erklären. Und hier versagt der Lamarckismus völlig.
2. Der Darwinismus[123], [125]. DARWIN geht von der Tatsache aus, daß die beschränkten Lebensbedingungen auf unserer Erde keine unbegrenzte Vermehrung der Organismenmenge erlauben. Fast jedes Lebewesen liefert aber während seines Einzeldaseins so viele Keime, daß, wenn alle aufkämen, schon nach ganz kurzer Zeit die Erde allein von einer Art übervölkert sein würde. Nur wenige Nachkommen eines Individuums bleiben aber am Leben, weil nämlich die Umwelt so viele in jedem Entwicklungsstadium von der Keimzelle an vernichtet. Die Nachkommen jedes Individuums unterliegen dem „Kampfe ums Dasein“ mit der Umwelt, wozu wir natürlich auch die anderen Organismen der gleichen oder anderer Arten zu rechnen haben. Wären alle Nachkommen ganz gleich, so könnte allein der Zufall darüber entscheiden, welche am Leben bleiben. Solche Zufälle haben auch sicher eine große Bedeutung. Da aber zuweilen unter den Nachkommen erbliche Verschiedenheiten bestehen, so werden in der Regel diejenigen in diesem Kampfe bevorzugt sein, die an dem Platze, wohin sie der Zufall verschlagen hat, durch ihre Besonderheiten erhaltungsfähig oder erhaltungsfähiger als die anderen sind. Es findet also eine Auslese (Selektion, natürliche Zuchtwahl) statt. Und wenn nun die ausgelesenen Varianten ihre Eigenschaften an ihre Nachkommen übertragen, bei denen sich die erblichen Variationen und der Kampf wiederholen, dann muß die Entwicklung zu immer besser angepaßten Formen führen. Entstehen können Organismen mit ganz beliebigen Eigenschaften, nützlichen, gleichgültigen oder schädlichen. Da alle mit schädlichen Eigenschaften früher oder später wieder verschwinden müssen, bleiben nur solche übrig, die besser angepaßt sind als die Besiegten, sich aber außerdem auch noch in vielen gleichgültigen Eigenschaften von diesen unterscheiden können. Nützlichkeit (d. h. Angepaßtsein) erklärt sich also nach dem Lamarckismus überhaupt nicht, da dieser das nützliche Reaktionsvermögen der Organismen auch gegenüber ihnen völlig fremden, neuen Außenverhältnissen als gegeben hinnehmen muß, nach dem Darwinismus dagegen aus den Vorzügen besser erhaltungsfähiger erblicher Eigenschaften im Kampfe ums Dasein. Darin liegt der große Fortschritt der DARWINschen Theorie gegenüber dem Lamarckismus. Sie wird, wie wir sahen, durch alle Beobachtungen unterstützt, die wir über die Entstehung neuer erblicher Eigenschaften bei Organismen bisher gemacht haben, wenn auch bei Annahme des Darwinismus noch immer mancherlei Schwierigkeiten zu überwinden bleiben.
Zweite Abteilung. Physiologie[126].
Die Physiologie hat die Aufgabe, die Lebenserscheinungen zu beschreiben, ihre Abhängigkeit von äußeren Faktoren zu studieren und sie soweit wie möglich auf ihre Ursachen zurückzuführen. Wie Chemie und Physik, so forscht also auch die Physiologie nach den Ursachen des Geschehens, sie ist eine Wissenschaft mit kausaler Fragestellung. Doch muß sie notwendigerweise auch die Bedeutung des Geschehens für den Organismus mit in Betracht ziehen. Wie in der Fragestellung, so folgt die Physiologie auch in ihrer Arbeitsmethode der Physik und Chemie: sie bedient sich in erster Linie des Experimentes.
Die Hauptergebnisse der physiologischen Forschung sind folgende:
1. Einen grundsätzlichen Unterschied zwischen den Lebenserscheinungen der Tierwelt und der Pflanzenwelt gibt es nicht. Das ist nicht überraschend, weil schon morphologisch Tier und Pflanze nur in ihren extremen Ausbildungen scharf unterscheidbar sind. Auf physiologischem Gebiet aber hat sich, je weiter die Forschung vorschreitet, desto deutlicher gezeigt, wie ähnlich das Leben in den beiden Hauptreichen verläuft. Dementsprechend gibt es eigentlich nur eine Physiologie, die Physiologie der Organismen. Ein Lehrbuch der Botanik hat aber selbstverständlich nur die Physiologie der Pflanzen darzustellen; doch soll, wo es nützlich erscheint, auf analoge Vorkommnisse im Tierreich kurz hingewiesen werden.
2. In mancher Hinsicht reagiert die lebende Pflanze nicht anders als beliebige tote Körper. Trotz ihres hohen Wassergehaltes ist sie im allgemeinen ein fester Körper und hat die physikalischen Eigenschaften eines solchen. Schwere, Festigkeit, Elastizität, Leitungsfähigkeit für Wärme und Elektrizität kommen ihr in gleicher Weise zu wie leblosen Körpern. So wichtig diese Eigenschaften nun auch für das Bestehen und für das Leben der Pflanze sind, so bedingen sie doch noch nicht das Leben selbst.
3. Die eigentlichen Lebenserscheinungen scheinen nämlich auf den ersten Blick recht verschieden zu sein von den Vorgängen, die man bei leblosen Körpern antrifft. So lange der Organismus in voller Lebenstätigkeit ist, können wir eine ununterbrochene Kette von Veränderungen an ihm wahrnehmen, die sich in dreifach verschiedener Weise äußern:
I. Ein Organismus besteht selbst dann, wenn eine Vergrößerung durch Wachstum nicht mehr erfolgt, keineswegs aus einer gleichbleibenden Stoffmasse. Während die äußere Form konstant bleibt, finden im Innern fortwährend Veränderungen statt; neue Stoffe werden von außen aufgenommen, werden im Innern umgewandelt und auch wieder nach außen abgegeben. Der Organismus besitzt einen Stoffwechsel.
II. Gewöhnlich aber verläuft dieser Stoffwechsel nicht in der Weise, daß die Stoffaufnahme der Stoffabgabe gleichkommt, sondern es wird mehr aufgenommen als abgegeben; die Masse nimmt zu, der Organismus wächst. Wachstum kennen wir auch an chemischen Ausfällungen (Niederschlägen) oder an Kristallen. Hier pflegt es indes so zu verlaufen, daß eine wesentliche Veränderung der Form nicht erzielt wird (bei Kristallen), oder daß die Gestaltsveränderung eine zufällige, keine gesetzmäßige ist (Niederschläge). Der Organismus aber nimmt unter gesetzmäßiger Gestaltsveränderung ganz bestimmte, immer wiederkehrende Formen an; er macht eine Entwicklung durch, und diese führt früher oder später zur Entstehung von neuen Organismen, Tochterindividuen; es tritt Fortpflanzung ein. Wachstum, Entwicklung und Fortpflanzung sind für die Lebewesen ungemein charakteristische Vorgänge.
Manche Niederschläge haben unter Umständen eine gewisse äußerliche Ähnlichkeit mit Pflanzen. Bringt man z. B. in eine mit Gelatine versetzte Lösung von gelbem Blutlaugensalz und Kochsalz etwas Kupfervitriol, dem Zucker zugegeben wurde, so bildet sich ein Niederschlag von Ferrocyankupfer, der zusehends wächst und in seiner Gestalt an Pflanzen erinnert. Es fehlt dieser „künstlichen Pflanze“ aber nicht nur die innere Struktur der wirklichen Pflanze, sondern vor allem auch die Fortpflanzung und die gesetzmäßige Entwicklung.
III. Endlich zeigen die Organismen Bewegungsvermögen; sie ändern entweder im ganzen den Ort, oder sie bringen kleinere oder größere Teile in andere Lagen. Da auch Anorganismen und tote Organismen Bewegungen ausführen können, so ist für die Lebewesen nur die Art und Weise, wie die Bewegung zustande kommt und unterhalten wird, charakteristisch.
In der Natur treten die drei genannten Prozesse, der Stoffwechsel, die Entwicklung und die Bewegungen, fast stets gleichzeitig auf. Der Stoffwechsel ist ohne Stoffbewegungen undenkbar, die Entwicklung ist immer mit stofflichen Veränderungen und mit Bewegungen verknüpft, die Bewegungen endlich können ohne Stoffwechsel und ohne Gestaltswechsel nicht stattfinden. Dennoch können wir in unserer Darstellung die drei Prozesse gesondert betrachten und die Physiologie in drei Abschnitte einteilen, nämlich:
Die Lehre vom Stoffwechsel oder die chemische Physiologie, auch wohl Physiologie der Ernährung genannt.
Die Lehre von der Entwicklung, Physiologie der Gestaltung, Formwechsel.
Die Lehre von den Bewegungen.
4. Diese Lebenserscheinungen sind durchaus an das Protoplasma gebunden und beruhen auf der eigentümlichen Art, wie diese Substanz auf Einflüsse der Außenwelt reagiert, d. h. vor allem auf ihrer Reizbarkeit und Regulationsfähigkeit.
a) Reizbarkeit. Bei den Reaktionen des Organismus ist in der Regel der Zusammenhang zwischen Ursache und Wirkung nicht so durchsichtig wie bei physikalischen und chemischen Vorgängen. Das rührt daher, daß wir kaum jemals die nächsten, sondern meist nur ganz indirekte Folgen einer äußeren Einwirkung zu sehen bekommen. Auch kann je nach dem Zustand des Protoplasmas ein und derselbe Faktor ganz verschiedenartige Wirkung haben. Hierfür ein Beispiel:
Befestigt man einen biegsamen Stab in horizontaler Lage an einem Ende, so wird sich das freie Ende durch das Gewicht des Stabes bis zu einem bestimmten Punkte abwärts biegen. Dasselbe tut jeder Pflanzenteil, und bei toten Pflanzenteilen bleibt es dabei. Hat man zu dem Versuche jedoch einen lebendigen, wachsenden Stengel benutzt, dann zeigt sich nach einiger Zeit in diesem eine Wirkung der Schwerkraft, die im Vergleich zu ihrer rein physikalischen Wirkungsweise durchaus überrascht: Der wachsende Teil des Stengels richtet sich durch eigene Tätigkeit wieder auf; er krümmt sich dem Zug der Schwere entgegen. Macht man den Versuch mit einer Pfahlwurzel, so wird diese, unter Entfaltung von Kraftäußerungen, die ihr Eigengewicht erheblich übertreffen, sich senkrecht abwärts krümmen; ein Rhizom von Scirpus dagegen würde in der Horizontallage weiterwachsen und würde auch seine wachsende Spitze wieder wagerecht stellen, wenn man es aus dieser Lage gebracht hätte. Bei diesen drei Versuchen sind die physikalischen Bedingungen jedesmal die gleichen: Die Erdschwere wirkt auf einen horizontalen Pflanzenteil. Das Resultat aber fällt so verschieden wie nur möglich aus.
Man muß in solchen Fällen annehmen, daß zwar die Einwirkung von außen zunächst stets den gleichen Effekt hat wie in Anorganismen — in unserem Beispiele würde also die Schwerkraft stets zunächst einmal eine Druckwirkung bedingen —, daß aber diese primäre Veränderung innere Tätigkeiten der Pflanze veranlaßt, wobei vielfach der Außenfaktor als auslösendes Moment aufzutreten scheint. Solche Vorgänge werden erst verständlich, wenn wir den Organismus mit einem Mechanismus vergleichen. Der Zusammenhang zwischen dem schwachen Fingerdruck, den wir auf den Abzugsbügel eines Gewehres ausüben, und der Flugbewegung des Geschosses ist nicht einfach. Der Druck bewirkt zunächst die Entspannung einer Feder; die frei gewordene Energie treibt einen Schlagbolzen auf die Zündmasse; diese explodiert und bringt das Pulver zur Explosion; die dabei entstehenden Gase erst schleudern das Projektil aus dem Lauf. Es leuchtet ein, daß die Kraft des Schlagbolzens keinerlei Beziehung zur Kraft des Fingerdruckes hat, den der Schütze ausübt, und daß ebensowenig eine Beziehung zwischen der Größe der Expansionskraft des Pulvers und der Schlagbolzenkraft besteht. Es werden vorhandene Energien, die der gespannten Feder und die des Pulvers, ausgelöst. Solche Auslösungen, vor allem Auslösungen, die einander folgen, die eine Kette von Prozessen bilden, treten uns bei allen Lebenserscheinungen entgegen; sie sind freilich nicht so einfach und übersichtlich wie bei den Mechanismen, weil sie sich durchweg im Protoplasma abspielen. Auslösungen, die in der lebenden Masse aufgespeicherte Spannkraft in kinetische Energie verwandeln, seien als Reizerscheinungen, der auslösende Faktor als „Reiz“ bezeichnet (vgl. aber S. 322).
So wie die Leistung einer Maschine nur verständlich wird, wenn man ihren Bau kennt, so ist auch die Kenntnis des äußeren und inneren Baues der Pflanze Vorbedingung für physiologische Studien. Es hat sich aber gezeigt, daß das Verständnis der Funktion aus dem Bau bei der Pflanze nicht annähernd in dem Maße erzielt werden kann wie bei der Maschine; es handelt sich im Organismus eben nicht um ein Ineinandergreifen von Rädern oder anderen Mechanismen, sondern wesentlich um eine Folge chemischer Reaktionen.
b) Regulationen. Maschinen können aber nicht nur das Wesen der Auslösung versinnbildlichen, sondern sie können auch noch die zweite weitverbreitete Eigenschaft des Organismus klarmachen, nämlich seine Regulationsfähigkeit. So wie an einer Maschine z. B. die Geschwindigkeit automatisch auf einer gewissen Höhe erhalten wird, so sehen wir auch in der Pflanze bei zahllosen Prozessen eine Selbststeuerung eintreten, die Qualität und Quantität eines jeden Geschehens regelt. Wenn es auch in der anorganischen Welt nicht an regulatorisch verlaufenden Vorgängen fehlt, so treten uns doch diese nicht in der Häufigkeit entgegen wie im Organismus. Deshalb kann man die Regulationsfähigkeit neben der Reizbarkeit als ein besonders wichtiges Merkmal der lebenden Wesen betrachten.
Wenn nun auch die Lebenserscheinungen bisher noch nirgends gründlich aufgehellt sind, so kann uns das doch nicht an der Überzeugung hindern, daß sie sich lediglich durch ihre außerordentlich große Komplikation von den Vorgängen in der leblosen Natur unterscheiden und im Prinzip einer physikalisch-chemischen Erklärung zugänglich sind.
5. Die Lebenstätigkeit der Pflanze vollzieht sich nur, wenn zahlreiche Bedingungen, die sog. allgemeinen Lebensbedingungen, erfüllt sind, die man in zwei Gruppen, innere und äußere Ursachen, einzuteilen pflegt[127]. Die inneren Ursachen des Lebens sind an das Protoplasma geknüpft. Sein Bau, seine Organisation bedingen nicht nur, daß das Geschehen im Organismus die Charakterzüge des Lebendigen an sich trägt, sondern daß es auch je nach der Abstammung der betreffenden Plasmamasse spezifisch verschieden ausfällt. Demnach ist das Vorhandensein einer lebenden Plasmamasse die fundamentalste Lebensbedingung. Alle anderen Lebensbedingungen können wir nach Wunsch schaffen oder wegnehmen; das Protoplasma dagegen können wir nicht synthetisch herstellen, es entsteht nur im Organismus durch die Tätigkeit schon existierenden Plasmas.
Das Protoplasma kann aber nur bei ständiger Wechselwirkung mit der Außenwelt etwas leisten. Dabei fällt der Außenwelt eine dreifache Rolle zu: sie liefert erstens das Material zum Aufbau des Pflanzenkörpers; sie wirkt zweitens als auslösendes Moment (Reiz, S. 184); sie versorgt endlich die Pflanze mit der nötigen Energie, mag diese als chemische Energie mit den Stoffen von außen aufgenommen werden oder in Form von Ätherschwingungen eindringen.
Unter den äußeren Faktoren, die für das Leben von Wichtigkeit sind, kann man die notwendigen oder unentbehrlichen von den entbehrlichen unterscheiden. Als unentbehrliche Bedingungen für die Lebenstätigkeit nennen wir vor allem eine gewisse Temperatur und das Vorhandensein bestimmter Stoffe sowie das Fehlen anderer, die schädigend oder tödlich wirken (Gifte); dagegen ist das Licht keine solche allgemeine Lebensbedingung. Manche Pflanzen verlangen freilich wenigstens für ihre oberirdischen Organe direktes Sonnenlicht; andere meiden dies und suchen den Schatten auf (Schattenpflanzen); wieder andere können ihren ganzen Lebenszyklus in vollkommener Dunkelheit durchmachen.
Die notwendigen Faktoren sind ferner an ganz bestimmte Grenzen gebunden. Ein Zuviel von ihnen (Überschreiten des „Maximums“) wirkt ebenso schädlich auf die Pflanze wie ein Zuwenig (Überschreiten des „Minimums“), und oberhalb des Minimums sieht man die Lebensäußerungen an Intensität zunehmen bis zum „Optimum“ und oberhalb von diesem wieder abnehmen. Die drei Punkte, Minimum, Maximum und Optimum, die uns bei der Abhängigkeit jeder Lebenserscheinung von einem Außenfaktor entgegentreten, nennt man die Kardinalpunkte der Einwirkung dieses Faktors (Fig. 259). Sie sind indes keineswegs Konstanten; sie sind vielmehr für die einzelnen Organismen und Lebenserscheinungen verschieden: sie ändern sich ferner mit der Dauer der Einwirkung des Faktors, und sie hängen auch vom Zustand der Pflanze sowie von anderen äußeren Faktoren ab.
Jede Überschreitung des Minimums wie des Maximums eines äußeren Faktors führt früher oder später zum Tod. Dieser kann also z. B. durch zu hohe (Hitzetod) oder zu niedrige Temperatur (Erfrieren) erfolgen; er kann durch ein Zuviel oder Zuwenig an Licht, durch ein Zuviel oder Zuwenig eines Stoffes bedingt sein; ist z. B. zu wenig Wasser gegeben, so spricht man zunächst von Welken und dann von Vertrocknen; ist ein Stoff in zu großen, schädigenden Mengen gegeben, von Vergiftung.
Die meisten Pflanzen werden durch bestimmte niedere Temperaturen zum Erfrieren[128] gebracht, fast alle werden durch hohe Temperaturen, die noch weit vom Siedepunkte des Wassers entfernt sind, getötet; nur manche Cyanophyceen ertragen die sehr hohe Temperatur gewisser heißer Quellen.
Empfindliche Pflanzen, insbesondere Pflanzen tropischer Herkunft, sterben schon bei Temperaturen über Null. Andere werden durch die Eisbildung im Innern getötet, und wieder andere können mehrfach im Winter hart gefrieren, ohne Schaden zu nehmen. So erträgt in Nordsibirien Cochlearia fenestrata eine Temperatur von -46° C ohne Schädigung, und gewisse Waldbäume halten sogar -60° aus. Bemerkenswert ist die Widerstandskraft niederer Organismen gegen extreme Kältegrade. So ertrugen in Versuchen PICTETs Diatomeen längere Zeit eine Temperatur von -200° C.
Durch Steigerung der Lichtintensität kann man schließlich wohl jede Zelle zum Absterben bringen, mag nun das Licht dabei im einzelnen mehr thermisch oder mehr chemisch wirken. Viele Bakterien sterben schon im hellen Tageslicht ab, weshalb diesem eine wichtige hygienische Bedeutung in unseren Wohnräumen zukommt.
Das Lichtbedürfnis wechselt aber nicht nur bei verschiedenen Pflanzenarten und je nach Gewöhnung auch wieder individuell, sondern es kann sich das Optimum der Lichtwirkung bei demselben Einzelwesen mit der Entwicklung verschieben. Viele tropische Kulturpflanzen, z. B. Kakao und Kaffee, verlangen während ihrer Jugend Schatten und müssen daher durch besonders angepflanzte schattenspendende Pflanzen (Albizzia-Arten, Musa) zunächst geschützt werden, während sie später die volle Tropensonne ertragen oder gar nötig haben.
Unter den stofflichen Einflüssen kommt oft dem Wasser eine besonders in die Augen fallende Bedeutung zu. Wenn Licht und Temperatur in optimalem Maße geboten sind, wie das in den Tropen zutrifft, hängt die Entwicklung der Pflanze vor allem vom Wasser ab. Ist dieses reichlich geboten, und erfolgen die Niederschläge auch gleichmäßig über das ganze Jahr verteilt, dann sehen wir den üppigsten Pflanzenwuchs in der Formation des tropischen Regenwaldes auftreten. Eine regelmäßig wiederkehrende Trockenperiode bedingt den sommergrünen Wald, geringere Niederschläge lassen die Formation der Savannen entstehen und noch weniger ausgiebige Niederschläge endlich die Wüsten[129].
Weitgehende, mit Austrocknung verbundene Wasserentziehung ertragen nur wenige Pflanzen. — In vielen Fällen beruht der bei niederer Temperatur eintretende Tod nicht auf einer direkten Kältewirkung, sondern auf ungenügender Wasserversorgung; die Wurzeln können dem kalten oder gar gefrorenen Boden nicht so viel Wasser entziehen, wie die oberirdischen Organe verdunsten.
6. Die Überschreitung des Maximums oder des Minimums der äußeren Faktoren führt aber keineswegs immer sofort zum Tod. Vielfach kann der Organismus zunächst in einen Zustand übergehen, den man als latentes Leben bezeichnet. Äußerlich kann man es dem Organismus nicht immer ansehen, ob er sich im Zustand des aktiven Lebens, des latenten Lebens oder des Todes befindet. Das latente Leben hat mit dem toten Zustand das gemeinsam, daß jede Lebenstätigkeit unterbleibt; aus dem latenten Leben kann aber durch geeignete Einwirkungen das aktive Leben wieder erweckt werden, was beim toten Zustand unmöglich ist.
Nicht immer freilich ist der Eintritt des latenten Lebens einfach die Folge der Überschreitung der extremen Kardinalpunkte. Vielfach arbeitet die Pflanze auch aus inneren Ursachen auf die Herstellung latenten Lebens hin (Samen und Sporen).
Im latenten Leben befinden sich vor allem viele Dauerzustände der Pflanzen, wie die Samen und Sporen. Sie sind in der Regel viel widerstandsfähiger gegen Austrocknung, Hitze und Kälte als Organe, die im aktiven Zustand sind. So ist bekannt, daß Bakteriensporen im feuchten Zustand eine Zeitlang Temperaturen von 100° und mehr ertragen können; genau so verhalten sich einige Samen (Medicago-Arten). Andererseits widerstehen Sporen und Samen in trockenem Zustand sogar einer Temperatur von -253°[130].
Erster Abschnitt. Stoffwechsel[131].
I. Die stoffliche Zusammensetzung der Pflanze[132].
Jede Beschäftigung mit dem Stoffwechsel setzt die Kenntnis der chemischen Zusammensetzung der Pflanze voraus. Diese studiert man mit den Methoden der Chemie.
Wasser und Trockensubstanz. Ein gewisser Einblick in die Zusammensetzung der Pflanze wird freilich schon ohne besondere Hilfsmittel gewonnen. Daß die Pflanze aus Wasser und Trockensubstanz besteht, weiß jeder, der Pflanzen getrocknet, für das Herbarium hergerichtet hat. Er weiß auch, wie durch diesen Wasserverlust fundamentale physikalische Eigenschaften der Pflanze, wie Festigkeit und Elastizität, beeinflußt werden. Mehrjährige Zweige von Schlingpflanzen z. B. (Cobaea, Passiflora), die in frischem Zustande außerordentlich biegsam und elastisch sind, werden nach dem Trocknen an der Luft starr und spröde; sie brechen wie Glas, wenn man sie zu biegen versucht. Nimmt man die Wage zu Hilfe, so stellt man leicht fest, wie groß der Anteil des Wassers an der Gesamtmasse der Pflanzensubstanz ist. Dabei genügt es freilich nicht, die Pflanzen der Luft zu exponieren: vielmehr muß ihnen im Exsikkator oder in einer Temperatur von etwas über 100° auch der nicht unbeträchtliche Rest von Wasser entzogen werden, den sie im sog. „lufttrockenen“ Zustand noch führen. Dann zeigt sich, daß der Wassergehalt sehr groß ist; er beträgt bei holzigen Teilen etwa 50%, bei saftigen Kräutern 70–80%, bei Sukkulenten und Früchten 85–95% und endlich bei Wasserpflanzen, namentlich Algen, 95–98% des Frischgewichts. Daß Körper mit so hohem Wassergehalt noch „fest“ sein können, erscheint wunderbar, findet aber seine Erklärung durch nähere Studien über die Verteilung des Wassers (S. 188).
Asche. So wie uns die Austrocknung zur Unterscheidung von Wasser und Trockensubstanz führt, so können wir mit Hilfe der Verbrennung zwischen verbrennbarer oder organischer Substanz und unverbrennbarer oder Aschensubstanz unterscheiden. Der Aschengehalt der Pflanzen fällt beim Verbrennen von Holz, beim Rauchen einer Zigarre ohne weiteres auf; daß auch winzige Zellhautfragmente oder Stärkekörner Asche hinterlassen, weist das Mikroskop nach. Über die quantitativen Verhältnisse gibt die Analyse Aufschluß, die vor allen Dingen zeigt, daß die verschiedenen Organe einer Pflanze nicht den gleichen Aschengehalt aufweisen; die Blätter z. B. pflegen mehr zu enthalten als die Stengel. So hat man gefunden, daß in den Blättern von Brassica rapa rund 20%, in den Stengeln 10% der Trockensubstanz aus Asche besteht (vgl. S. 204).
Aber auch je nach dem Standort und anderen äußeren Einflüssen kann die Aschenmenge variieren. Andererseits können wieder verschiedene Spezies, selbst wenn sie den gleichen äußeren Bedingungen ausgesetzt sind, doch ganz verschiedene Mengen von Asche führen.
Wenn auch die Mehrzahl der überhaupt auf der Erde vorkommenden Grundstoffe in der Asche von Pflanzen gefunden worden ist, so treten doch nur wenige Elemente in so großer Menge in ihr auf, daß man sie quantitativ zu bestimmen pflegt. Es sind dies von Metalloiden Cl, S, P, Si und von Metallen Na, K, Mg, Ca, Fe.
Organische Substanz. Die organische Substanz besteht in erster Linie aus den Elementen H, O, N und C; sie werden bei völliger Verbrennung in flüchtige Stoffe übergeführt, nämlich in Kohlensäure, Wasser, Ammoniak oder freien Stickstoff. Auch in der Asche sich findende Elemente können in der lebenden Pflanze organisch gebunden sein. — Der Masse nach nimmt stets der Kohlenstoff die erste Stelle in der organischen Substanz ein, denn die Trockensubstanz besteht etwa zur Hälfte aus ihm. Auch ohne chemische Untersuchung erkennt man den reichen Gehalt der Pflanze an diesem Element durch das „Verkohlen“ jedes beliebigen Teiles, wenn er erhitzt wird. Die Betrachtung eines Stückes Holzkohle, in dem sich die feinste Holzstruktur erhalten hat, läßt weiterhin darauf schließen, wie gleichmäßig die Verteilung des Kohlenstoffes in der Substanz und wie vorherrschend seine Masse in dieser ist.
Herkunft der Stoffe. In größerer Menge finden sich somit nur folgende 13 Elemente in der Pflanze:
H, Cl, O, S, N, P, C, Si und Na, K, Mg, Ca, Fe.
Während des Wachstums nimmt ihre Menge dauernd zu; sie werden demnach fortwährend von außen aus dem Boden, dem Wasser, der Luft oder aus anderen Organismen aufgenommen.
In der Regel werden nur Gase und Flüssigkeiten in die Pflanze eindringen. Die starre Zellwand gestattet festen Körpern den Zutritt ins Innere erst, nachdem sie gelöst sind. Wo die Zellwand aber fehlt, wie bei Flagellaten und Schleimpilzen, da kann das nackte Protoplasma auch feste Körper umfließen und so ins Innere aufnehmen.
Die Tiere stimmen in ihrer chemischen Zusammensetzung im wesentlichen mit der Pflanze überein. Die Stoffaufnahme erfolgt aber bei ihnen zunächst in das Darmsystem. Der Unterschied gegenüber den Pflanzen ist indes nicht so groß, als er auf den ersten Blick zu sein scheint; denn im allgemeinen treten die Stoffe auch erst, nachdem sie flüssig geworden sind, in die Zellen ein.
II. Die Nährstoffe, ihre Aufnahme und ihre Bewegung in der Pflanze.
Die aufgenommenen Stoffe können notwendige, überflüssige oder schädliche sein. Das läßt sich in jedem einzelnen Fall nur durch das Experiment feststellen, denn es wäre ein großer Irrtum, zu glauben, daß alle konstant vorkommenden Stoffe auch notwendig sind. Es hat sich vielmehr gezeigt, daß im allgemeinen nur 10 von den eben genannten 13 Elementen wirklich unentbehrlich sind. Die notwendigen Stoffe kann man als Nährstoffe bezeichnen. Sie treten fast alle nicht als Elemente, sondern als Verbindungen in die Pflanze ein. Nur eines von ihnen, der Sauerstoff, findet sowohl in Verbindungen als auch in freiem Zustand Verwendung in der Pflanze. Wir unterscheiden a) Wasser, b) in Wasser gelöste Salze, c) Gase als die drei Hauptgruppen von Nährstoffen.
Ohne dauernde Zufuhr von Nährstoffen kann die Pflanze nicht existieren. Das ist für die wachsende Pflanze selbstverständlich; denn hier tritt ja eine Körpervergrößerung auf Kosten der von außen aufgenommenen Stoffe ein. Aber auch die ausgewachsenen Teile bedürfen ständig neuer Stoffzufuhr, da ihr „Stoffwechsel“ mit ständigen Stoffverlusten verbunden ist.
a) Das Wasser.
Die ganze Fülle von chemischen Prozessen, die den Stoffwechsel der Pflanze ausmachen, vollzieht sich in wässeriger Lösung. Daher ist das Wasser ein ganz unentbehrlicher Bestandteil der Pflanze; alle lebenstätigen Pflanzenteile sind stark wasserdurchtränkt: die Zellwände sind mit Wasser imbibiert, im Zellumen finden sich die großen mit wässerigen Lösungen erfüllten Vakuolen vor, und der Träger des Lebens, das Protoplasma, ist stets etwa zu 75% oder mehr aus Wasser aufgebaut. Nur in diesem Zustand der annähernden Wassersättigung vermag die Pflanze voll zu vegetieren; jeder stärkere Wasserentzug vernichtet entweder das Leben völlig oder setzt wenigstens alle Lebensäußerungen so sehr herab, daß man sie nicht mehr nachweisen kann.
Bei den Vegetationsorganen, insbesondere der höheren Pflanzen, führt meist schon ein weitgehendes Welken zum Tod; nur selten können Pflanzen, wie gewisse Sukkulenten, etwa 9⁄10 ihres Wassergehaltes einbüßen, ohne geschädigt zu werden. Um so auffallender ist es, daß manche epiphytische und xerophile Farne, gewisse Isoëtes-Arten Algiers und Selaginella lepidophylla, die in den regenarmen Hochebenen Zentralamerikas zu Hause ist, durch einen bis zur „Lufttrockenheit“ fortschreitenden Wasserverlust nicht getötet werden, sondern in latentem Leben verharren, um sofort bei Wiederbefeuchtung weiter zu wachsen. Bei niederen Pflanzen, vor allem bei Flechten und Moosen, ist diese Austrocknungsfähigkeit viel weiter verbreitet und gestattet ihnen die Besiedelung von Felsen, Baumrinden und ähnlichen Standorten, an denen sie nur unmittelbar während und nach einem Regen wasserdurchtränkt sind, um bald darauf wieder, von der Sonne ausgedörrt, zu pulverisierbaren Massen zu erstarren.
Bei Samen und Sporen ist in der Regel mit der Ablösung von der Mutterpflanze eine Austrocknung verbunden, die fast überall gut und lange ertragen wird. Auch hier hört während des wasserarmen Zustandes jede Lebensäußerung auf.
Manche Samen verlieren ihre Keimkraft im trockenen Zustand erst nach einem oder einigen Jahren, manche schon nach Tagen, und wieder andere sollen ein Austrocknen überhaupt nicht vertragen. — Es muß aber hervorgehoben werden, daß Pflanzenteile auch im Zustande völliger Lufttrockenheit immer noch etwa 9–14% Wasser enthalten. Selbst über der Schwefelsäure des Exsikkators bewahren Samen noch wochenlang 6 und mehr Prozent Wasser. Aber auch den weitgehenden Wasserverlust durch Trocknung bei 110° oder durch Einwirkung von absolutem Alkohol vertragen manche Samen und Sporen ganz gut.
Aufnahme des Wassers.
Wasseraufnahme der Zelle. Alle Teile der Zelle sind, wie bemerkt, wasserdurchtränkt. Die Zellhaut führt das Wasser zwischen ihren kleinsten Teilchen in so feiner Verteilung, daß man auch mit Hilfe der stärksten Vergrößerungen Wasser und feste Substanz nicht unterscheiden kann. Läßt man das Wasser verdunsten, so treten nicht etwa an seiner Stelle lufterfüllte Hohlräume auf, sondern es findet eine Zusammenziehung der Zellhaut statt. Umgekehrt ist die Wasseraufnahme in trockene oder in nicht voll wassergesättigte Zellhäute mit einem Aufquellen verbunden. Unter „Quellung“[133] versteht man die Volumvergrößerung, die ein Körper durch Einlagerung von Flüssigkeit erfährt. Bei gegebener Temperatur ist die aufgenommene Menge Flüssigkeit eine begrenzte. — Es gibt Substanzen, die in Alkohol oder Xylol usw. quellbar sind; die pflanzliche Zellhaut aber quillt in Wasser. Dabei nehmen die Wände der Holzzellen etwa 1⁄3 ihres Gewichts, die Membranen mancher Algen und einzelner Samen- und Fruchtschalen das Mehrfache ihres Gewichts an Wasser auf. Die Wasseraufnahme erfolgt mit beträchtlicher Energie und dementsprechend auch gegen bedeutende Widerstände.
Das lufttrockene Protoplasma mancher Samen und Sporen nimmt gerade wie die Zellwand Wasser durch Quellung auf. Ähnlich wie Gummi arabicum verliert es aber dabei den Charakter des festen Körpers und geht in eine kolloidale Lösung über. In der gewöhnlichen, lebenstätigen Zelle hat dann das Protoplasma in der Regel die Eigenschaften einer solchen, doch können auch einzelne Partien festere Konsistenz annehmen. Kolloidale Lösungen haben ja stets die Neigung, aus dem flüssigen (Sol-) Zustand in den Gelzustand überzugehen.
Der Zellsaft endlich ist immer eine molekulare Lösung von Kristalloiden in Wasser, denen auch Kolloide beigemengt sein können.
Nur eine Zelle, die nicht vollkommen wassergesättigt ist, kann ihrer Umgebung Wasser entziehen. Es fragt sich also, wann ist die Zelle wassergesättigt? Für die Zellwand ist diese Frage rasch beantwortet: Sättigung ist eingetreten, wenn das Quellungsmaximum erreicht ist. Viel schwieriger ist es, für das Protoplasma und den Zellsaft die Grenzen der Wasserkapazität zu bestimmen. — Halten wir uns zunächst an den Zellsaft! Wir nehmen der Einfachheit halber zunächst an, er bestehe lediglich aus Kristalloiden, und er sei direkt von einer Zellhaut umschlossen, ohne durch Protoplasma von ihr getrennt zu sein. Wir füllen also einen Schlauch aus Zellulose mit einer Lösung, z. B. von Kochsalz, und tauchen ihn in Wasser; dann wird ein Diffusionsprozeß beginnen. Wasser bewegt sich ins Innere des Schlauches, Salz dagegen tritt aus dem Innern aus. Und wenn auch die Zellhaut dem Durchtritt der Salze einen größeren Widerstand entgegensetzt als dem des Wassers, so wird der Diffusionsprozeß doch so lange fortgesetzt werden, bis innerhalb und außerhalb überall die gleiche Konzentration herrscht. Eine Wand, die für Wasser und Salz durchlässig ist, wirkt also auf die Diffusionsbewegung, die in jeder freien Flüssigkeitsmasse eintritt, nur insofern ein, als sie die Geschwindigkeit dieses Vorganges verringert. Im Endzustand aber herrscht gleiche Konzentration des Salzes auf beiden Seiten der Membran.
Fig. 234. Osmometer. Schematisch. T Tonzelle, N Niederschlagsmembran, R Manometer, Q Quecksilber, Z Zuckerlösung. 1 Osmometer nach Füllung mit der Lösung in Luft. 2 Dasselbe nach Eintauchen in Wasser. Ein osmotischer Druck ist aufgetreten, das Quecksilber dementsprechend im Manometer gestiegen. Nach URSPRUNG.
Wesentlich anders verläuft der Diffusionsprozeß, wenn die Wand aus einer Substanz besteht, die für Wasser wohl, für Salz dagegen gar nicht permeabel ist. Solche Membranen nennt man semipermeabel, und man erhält sie z. B., wenn man eine Kupfervitriollösung mit Ferrocyankalium oder Leim mit Gerbsäure in Berührung bringt. Da die semipermeablen Membranen nur eine geringe Festigkeit besitzen, kann man aus ihnen nicht wie aus Zellulose Schläuche herstellen. Man verleiht ihnen die nötige Festigkeit dadurch, daß man sie auf einer porösen Wand von gebranntem Ton auflagert; man benutzt also die bekannten, bei gewissen galvanischen Elementen zur Verwendung kommenden Tonzellen und lagert ihnen auf der Innenseite eine Schicht von Ferrocyankupfer auf. Füllt man dann die so vorbereitete Tonzelle mit einer Salzlösung, verschließt sie und taucht sie in Wasser ein, so kann wohl das Wasser nach innen, aber nicht das Salz nach außen wandern; die Diffusion findet also einseitig statt und als Folge davon tritt ein Druck im Zellinnern auf, den man als osmotischen Druck zu bezeichnen pflegt. — Ähnlich wie Kochsalz können auch andere Salze, doch auch andere Verbindungen, sofern sie nur wasserlöslich sind und Ferrocyankupfer schlecht durchwandern können, einen osmotischen Druck erzeugen.
Zum Nachweis und zur Messung des osmotischen Druckes[134] bedient man sich seit PFEFFER (1877) der eben geschilderten Tonzelle, die eine Niederschlagsmembran von Ferrocyankupfer auf der Innenseite erhalten hat. Sie wird mit Zuckerlösung gefüllt, verschlossen und mit einem Quecksilbermanometer versehen. Das Quecksilber stellt sich dann in beiden Schenkeln in gleiche Höhe ein (Fig. 234 1). Wird nun die Tonzelle in Wasser eingetaucht, so dringt dieses ins Zellinnere ein, und es entsteht ein Innendruck („osmotischer Druck“), der sich am Steigen des Quecksilbers im rechten Schenkel bemerkbar macht (Fig. 234 2). Das Steigen erfolgt anfangs rasch, später langsam, und schließlich — nach vielen Stunden — ist der Maximaldruck erreicht. Er tritt dann auf, wenn durch den Druck der Quecksilbersäule dem weiteren Eindringen von Wasser ein Ziel gesetzt wird. Die Höhe des Quecksilberstandes gibt also direkt das Maß für den osmotischen Druck, den man in Atmosphären anzugeben pflegt.
Messungen mit solchen „Osmometern“ haben ergeben, daß der osmotische Druck innerhalb gewisser Grenzen der Konzentration der angewandten Lösung proportional ist; für eine 1%ige Rohrzuckerlösung fand PFEFFER 2⁄3 Atm. Vergleicht man mit Rohrzucker andere nicht dissoziierte organische Substanzen, so zeigt sich, daß allgemein die osmotische Wirkung der Zahl der gelösten Moleküle proportional geht; äquimolekulare Lösungen sind isosmotisch. Es ist deshalb zweckmäßig, statt der prozentischen Lösungen molekular-normale Lösungen zu verwenden, im allgemeinen volumnormale. Bei dissoziierenden Verbindungen, z. B. den Salzen, wirken auch die einzelnen Ionen neben den undissoziierten Molekülen. Eine Lösung von 0,1 Mol. KNO3 hat deshalb eine viel größere osmotische Wirkung als 0,1 Mol. Rohrzucker.
Vergleichen wir diese Tonzelle mit einer Pflanzenzelle, so entspricht die Zellhaut der Wand der Tonzelle, das Protoplasma dagegen dem Ferrocyankupfer; denn das Protoplasma ist, wenigstens solange es lebendig ist, annähernd semipermeabel, die Zellwand dagegen permeabel. [Es wird freilich S. 207 gezeigt werden, daß die Impermeabilität des Protoplasmas für viele gelöste Körper nicht besteht, und es mag hier betont sein, daß es auch semipermeable Zellhäute gibt[135].] Es wird also auch in die pflanzlichen Zellen Wasser einströmen, ohne daß Salz austritt, und somit wird ein osmotischer Druck entstehen. Das Protoplasma dehnt sich unter diesem Innendruck ohne wesentlichen Widerstand aus; die Zellhaut dehnt sich zwar ebenfalls aus, aber sie übt auch vermöge ihrer Elastizität einen erheblichen Gegendruck aus. Dieser nimmt mit dem Anwachsen des Innendruckes zu und führt schließlich dahin, daß weiteres Wasser nicht mehr aufgenommen werden kann.
Auf den Wassergehalt des Protoplasmas wollen wir nicht näher eingehen; es sei nur bemerkt, daß auch er begrenzt sein muß, weil das Protoplasma sich einerseits unter dem Druck des Zellsaftes, andererseits unter dem der Zellhaut befindet.
Die Dehnung der Zellwand unter dem Einfluß des Innendruckes ist oft eine recht beträchtliche; sie hängt einerseits von der Größe des Druckes, andererseits von den elastischen Eigenschaften der Zellhaut selbst ab. Sehr häufig können Zellwände durch den Innendruck um 10–20%, manchmal sogar um 50% gedehnt werden. Sticht man die Zelle an oder tötet man ihr Protoplasma, so hört der Druck auf, und die Membran zieht sich elastisch auf ihre ursprüngliche Länge zusammen; während der Dehnung war sie also gespannt, jetzt ist sie entspannt (Fig. 235). Diese Spannung aber hat für die Pflanzenzelle eine große Bedeutung; durch sie wird die Zellhaut fester, gerade wie auch ein dünner Kautschukballon durch Einpressung von Luft gegen Gestaltsänderung widerstandsfähiger wird. Eine Zelle, deren Haut durch den Innendruck gespannt ist, heißt turgeszent. Dementsprechend nennt man auch den Innendruck „Turgordruck“[136].
Der Turgordruck kann bei embryonalen Zellen des Vegetationspunktes, die noch keine Vakuolen führen, lediglich auf der Quellung des Protoplasmas beruhen. Bei der typischen ausgewachsenen Zelle aber pflegt man von dem dünnen Protoplasma ganz abzusehen und zu sagen, daß der osmotische Druck der Vakuolenflüssigkeit direkt auf die Zellmembran einwirkt und diese spannt.
Diese Festigung der Pflanze durch die elastische Dehnung der Zellhaut ist sehr wichtig, sie ist die einfachste und vielfach alleinige Art der Zellenfestigung. Sie ist aber natürlich von der Gegenwart einer genügenden Wassermenge abhängig; nimmt man eine pralle Zelle aus dem Wasser und läßt sie an der Luft Wasser abgeben, so verschwindet immer mehr die Spannung ihrer Wand und damit die Festigkeit; die Zelle wird schließlich welk, d. h. schlaff. Durch erneute Wasserzufuhr kann der frühere turgeszente Zustand wieder hergestellt werden. Solange eine Zelle das Maximum ihres Wassergehaltes nicht besitzt, wirkt sie wie eine Saugpumpe, sie hat also ein „Saugvermögen“. Um dieses Saugvermögen[137] oder diese Saugkraft voll zu verstehen, kehren wir nochmals zu der PFEFFERschen Zelle (Fig. 234) zurück. Diese entwickelt nach der Füllung mit der Rohrzuckerlösung in dem Moment, wo wir sie in Wasser tauchen, ein großes Saugvermögen; ihre Saugkraft nimmt aber offensichtlich in dem Maße ab, als mit dem Eindringen von Wasser sich der Innendruck steigert; schließlich wenn der volle Innendruck eingetreten ist, der maximale „osmotische Druck“ sich ausgebildet hat, ist die Saugkraft = Null geworden. Um die Größe der Saugkraft beim Beginne des Versuches zu messen, wird man nach Eintauchen des Osmometers (Fig. 234 1) in Wasser den Quecksilberdruck soweit erhöhen müssen, daß überhaupt kein Wasser einströmen kann. Die Höhe dieser Quecksilbersäule ist dann das Maß für die Saugkraft, und ein Versuch zeigt, daß diese so groß ist wie der osmotische Druck, den die Lösung entwickeln kann. Und von dieser Höhe sinkt dann, wenn Wasseraufnahme ermöglicht wird, die Saugkraft bis auf den Wert Null. In den zwischen den Extremen gelegenen Stadien findet man ihren Wert so, daß man von der ursprünglichen Saugkraft des Inhaltes den jeweiligen Manometerdruck abzieht. In ganz entsprechender Weise wird die Saugkraft der pflanzlichen Zelle gefunden, indem man von der Saugkraft des Zellsaftes den Druck der Zellhaut abzieht.
Fig. 235. Einzelliges Stammglied einer Nitella (Characee) etwa 6mal vergrößert. F Frisch und durch Turgordruck gespannt. P Dasselbe nach zerstörtem Turgordruck, schlaff, kürzer und schmäler; ss Seitenglieder. Nach NOLL.
Da man an der Pflanzenzelle kein Manometer anbringen kann, ist auch eine direkte Messung des osmotischen Druckes in ihr unmöglich. Doch kann man auf Umwegen, nämlich durch Studium der plasmolytischen Erscheinungen zu diesem Ziele gelangen. Bringt man eine turgeszente Zelle in eine Salzlösung, die osmotisch wirksamer ist als der Zellsaft, so tritt zunächst eine Verkürzung der Zelle ein, die bis zur völligen Entspannung der Membran geht, sodann aber erfolgt eine Abhebung des Protoplasmas von der Zellwand, weil ja die Zellwand sich nicht weiter verkürzen kann, während das Protoplasma dauernd der sich weiter verkleinernden Vakuole folgt. Diese Abhebung („Plasmolyse“) beginnt an den Ecken und führt schließlich zu einer Abrundung des Plasmas im Innern der Zellhaut (Fig. 236). Es ist im Grunde gleichgültig, welche Stoffe man zur Plasmolyse verwendet; sie dürfen nur das Plasma nicht schädigen, und das Plasma muß für sie impermeabel sein. Am besten eignet sich Rohrzucker, während der früher viel benutzte Kalisalpeter doch sehr stark eindringt.