ERSTER TEIL Allgemeine Botanik.
Reading edition
Erste Abteilung. Morphologie.
Die Morphologie der Pflanzen lehrt uns die äußere Gestalt und den inneren Bau der Gewächse sowie die ontogenetische Entwicklung ihres Körpers und seiner Glieder kennen. Sie strebt darüber hinaus ein wissenschaftliches Verständnis der Pflanzenformen an, indem sie sich bemüht, die Bedeutung und die phylogenetische Herkunft der Pflanzenteile festzustellen und die Ursachen für die Gestaltungsvorgänge zu ermitteln.
1. Man lernt nämlich den äußeren und inneren Bau eines Lebewesens nur dann verstehen, wenn man sich erstens klar bewußt wird, daß das Tier oder die Pflanze ein lebender Organismus ist, d. h. ein Gebilde, dessen wichtigste Glieder nicht bedeutungslose Anhängsel, sondern für das Leben notwendige Organe sind, durch deren harmonisches Zusammenarbeiten erst das Leben des Ganzen zustande kommt[4]. Fast alle äußeren Teile der Pflanze sind, wie beim Tiere, solche Werkzeuge für bestimmte Lebensverrichtungen. Aber nur dann können die Teile des Körpers ihre Leistungen im Dienste des ganzen Organismus erfüllen, wenn sie äußerlich und innerlich im großen und ganzen leistungsfähig gebaut sind, oder, wie man auch sagt, wenn ihr Bau einigermaßen ihren Funktionen entspricht, ihnen angepaßt ist. Da nun die einzelnen Teile bei höheren Pflanzen verschiedene Funktionen haben, so wird es verständlich, daß sie auch ganz verschiedenen äußeren und inneren Bau besitzen.
Um ein volles Verständnis vom Bau eines Organismus zu gewinnen, muß man sich weiter über die Lebensverhältnisse klar werden, unter denen er zu leben gewohnt ist: man muß seine Umwelt kennen. Jede Pflanze besitzt nämlich, wie das Tier, Baueigentümlichkeiten, die es ihr nur ermöglichen, unter bestimmten Außenbedingungen zu leben, wie sie nicht überall da vorhanden sind, wo wir auf der Erde Gewächse antreffen. Im Wasser z. B. sind die Lebensbedingungen ganz anders als in der Wüste beschaffen. Dementsprechend sind die Wüstenpflanzen und die Wassergewächse völlig verschieden gebaut und nur imstande, in ihren gewohnten Verhältnissen oder solchen zu gedeihen, die diesen einigermaßen ähnlich sind; jedenfalls können aber die Wüstengewächse nicht im Wasser und die Wasserpflanzen nicht in der Wüste leben. Ein Organismus ist also nur dann lebensfähig, wenn sein äußerer und innerer Bau auch genügend auf die Umwelt abgestimmt, wenn er an seine Lebensverhältnisse angepaßt ist.
Freilich lehrt eindringende morphologische Forschung alsbald, daß zwar fast ein jedes Körperglied der Pflanze seine Funktionen hat, daß aber längst nicht alle Eigentümlichkeiten seines äußeren und inneren Baues als Anpassungen an diese Funktionen oder als Anpassungen an die Umwelt gedeutet werden können: nur ein Teil der Merkmale eines Pflanzengebildes steht in solchen Beziehungen zu seinen Verrichtungen oder zur Umgebung, so z. B. bei den Laubblättern der Reichtum an grünem Farbstoff und die flächenförmige Ausbildung zu ihrer Hauptfunktion, der Kohlensäureassimilation. Solche Eigenschaften bezeichnet man wohl auch als nützlich für den Organismus oder als Anpassungsmerkmale. Daneben gibt es aber genug gleichgültige, so an vielen Blättern wohl die Beschaffenheit ihrer Ränder (Ganzrandigkeit, Sägung, Kerbung der Ränder u. dgl.), ja selbst ungünstige (wie das Fehlen des grünen Farbstoffes in größeren Teilen der Blätter, z. B. bei manchen wegen solcher „Weißbuntheit“ gern kultivierten Ahornrassen), sofern sie den Organismus nicht unfähig zum Leben machen. Eine Eigenschaft kann ferner bei einer Art mehr oder weniger nützlich, bei einer anderen gleichgültig oder gar schädlich sein. Solche Tatsachen zeigen nachdrücklich, wie vorsichtig man bei der Beurteilung der Bedeutung aller organischen Formen und Strukturen sein muß, zumal viele Annahmen über ihren Nutzen sich nur sehr schwer durch Versuche auf ihre Richtigkeit prüfen lassen[5].
2. Aber noch in einer zweiten Richtung strebt die Morphologie wissenschaftliches Verständnis der Pflanzenformen an. Alle lebenden Pflanzen betrachten wir als mehr oder weniger blutsverwandt. Aus einfachen, ungegliederten Formen, aus Einzelzellen, sind phylogenetisch allmählich die am höchsten organisierten Wesen mit zahlreichen verschiedenen Organen hervorgegangen. Dabei haben die Organismen und ihre Teile mannigfaltige Weiter- und Umbildungen erfahren, indem z. B. einzelne Organe durch Veränderungen ihres Baues neue Funktionen übernahmen oder neuen Lebensverhältnissen angepaßt wurden. Eine sehr wichtige Aufgabe der Morphologie ist es nun, diese phylogenetischen Umbildungen zu erforschen. Da die stammesgeschichtliche Entwicklung aber meist nicht direkt verfolgt, sondern nur erschlossen werden kann, so ist die Morphologie zur Lösung dieser Aufgabe auf indirekte Methoden angewiesen. Die wichtigsten Aufschlüsse in dieser Hinsicht gewinnt sie 1. durch das Studium der Ontogenie der Organismen, ferner 2. durch die Vergleichung der jetzt bestehenden Lebewesen untereinander und mit solchen, die in früheren Erdperioden gelebt haben. Die Ontogenie eines Organismus durchläuft nämlich häufig innerhalb gewisser Grenzen Entwicklungsstadien, die man als phylogenetische betrachten darf; sie kann daher zur Ermittelung der stammesgeschichtlichen Entwicklung beitragen. Und die vergleichende Forschung bemüht sich, die verschiedenen Gestaltungen durch Zwischenglieder zu verbinden. Da aber die Ontogenie die Phylogenie niemals vollständig oder unverändert wiederholt und die Zwischenglieder zwischen den verschiedenen Formen vielfach fehlen, so bleiben freilich die Ergebnisse auch dieser Richtung der morphologischen Forschung entsprechend unvollkommen.
Haben wir durch eingehende Untersuchungen die Überzeugung gewonnen, daß verschieden gestaltete Glieder des Pflanzenkörpers einen gemeinsamen phylogenetischen Ursprung haben, so bezeichnen wir die hypothetische Ursprungsform, von der wir sie ableiten, als ihre Grundform, die verschiedenen Umbildungen aber, die die Organe im Laufe der Stammesgeschichte erfahren haben, auch wohl als ihre Metamorphosen. Eines der allerwichtigsten Ergebnisse der Morphologie besteht in dem Nachweise, daß die mannigfaltig gestalteten äußeren und inneren Teile selbst der am reichsten gegliederten Pflanzen sich auf ganz wenige Grundformen zurückführen lassen, nämlich bei den höher organisierten Pflanzen die äußeren Teile auf Wurzel, Stengel und Laubblatt, ferner bei allen Pflanzen die inneren Teile auf die Zellen und ihre Bestandteile. Die Organe, die sich aus einer gemeinsamen Grundform phylogenetisch weiter entwickelt haben, nennen wir homolog, mögen sie auch noch so verschieden aussehen. Ihnen schreiben wir gleichen morphologischen Wert zu. Homolog sind z. B. die Laubblätter und die Blätter der Blüten (die Kelch-, Kron-, Staub- und Fruchtblätter), ferner auch die Laubblätter, die Blattranken (Fig. 207) und die Blattdornen (Fig. 195). Organe völlig verschiedenen Baues und ganz verschiedener Funktion können also doch homolog sein, also den gleichen morphologischen Wert besitzen. Andererseits haben sich oft Organe mit gleichem Bau und mit gleicher Funktion (z. B. Knollen Fig. 201, 203, 204, Dornen Fig. 195, 197, 198, Ranken Fig. 206–208) phylogenetisch aus verschiedenen Grundformen entwickelt. Solche Organe nennt man analog (zahlreiche Beispiele vgl. S. 141 ff.). Wenig differenzierte Gebilde ohne deutlich ausgeprägte Funktionen, die sich aus vollkommeneren rückgebildet haben, bezeichnen wir als reduziert.
3. Schließlich setzt sich die Morphologie die Aufgabe, die Ursachen oder Bedingungen zu ermitteln, die wie jedem Naturgeschehen, so auch den Vorgängen der äußeren und inneren Ausgestaltung der Pflanze und ihrer Teile, ferner ihren vererbbaren (phylogenetischen) Umwandlungen zugrunde liegen, und darüber Klarheit zu gewinnen, wie sich im Laufe der stammesgeschichtlichen Entwicklung die Eigenschaften ausbilden konnten, die wir als Anpassungsmerkmale bezeichnet haben. Den Teil der Morphologie, der sich mit solchen Fragen beschäftigt, kann man experimentelle Morphologie nennen. Die Mehrzahl ihrer Probleme findet man aber zweckmäßiger meist, so auch in unserem Lehrbuche, als besonderen Abschnitt der Physiologie, d. h. des Zweiges der Botanik behandelt, der sich überhaupt mit den Lebensvorgängen der Pflanzen beschäftigt (Entwicklungsphysiologie).
Die Morphologie kann man zerlegen in die Lehre vom äußeren Bau (äußere Morphologie) und in die Lehre vom inneren Bau (innere Morphologie oder Anatomie). Für unser Buch aber wäre eine solche Gliederung nicht zweckmäßig. Wollen wir doch die Glieder als Organe mit bestimmten Lebensverrichtungen begreifen lernen. Dafür aber ist es notwendig, zusammenhängend zu zeigen, in wie inniger Beziehung vielfach nicht nur der äußere, sondern auch der innere Bau eines Organes zu seinen Funktionen steht. Nicht die Pflanze als totes Gebilde, sondern als lebender Organismus soll uns ja in erster Linie beschäftigen.
Die erste Frage, die es da zu beantworten gilt, ist die nach dem Träger der Lebenserscheinungen. Woran ist das Leben gebunden? Nur an einen Teil der ganzen Substanz einer Pflanze, nämlich an das Protoplasma. Das Protoplasma aber ist in der Regel eingeschlossen in die Zellen, die man als Elementarteile des Organismus ansehen kann. Infolgedessen müssen wir den Bau der Zellen vor allem kennen lernen. Den Teil der Morphologie, der dieser Aufgabe dient, nennt man Zellenlehre oder Zytologie. Die Zellverbände (Gewebe) des Pflanzenkörpers bilden alsdann den Gegenstand eines zweiten Teiles der Morphologie, der Gewebelehre oder Histologie. Endlich mit den äußeren Gliedern als Organen der Pflanze, und zwar mit ihrem äußeren und inneren Bau, beschäftigt sich die Organlehre oder Organographie.
Erster Abschnitt. Zellenlehre (Zytologie).
I. Gestalt und Größe der Zellen.
Die Pflanzen werden, gleich den Tieren, aus Elementarteilen aufgebaut, die wir als Zellen bezeichnen. Das sind bei den Pflanzen meist mikroskopisch kleine Kämmerchen, deren Wände im Gegensatze zu den Zellen der Tiere von besonderen Häuten gebildet werden. Die Zellformen entsprechen im einfachsten Falle Kugeln, meist aber kleinen Würfeln, Polyëdern oder Prismen, die bei vielzelligen Organen in großer Menge aufeinander geschichtet sind; auch langgestreckte, ja faser- oder schlauchförmige Zellen kommen häufig vor. Diese Kämmerchen, von denen jedes aus den Kammerwänden, der Zellhaut oder Zellmembran, und aus seinem Innenraum, dem Zellraum oder Zelllumen, besteht, sind im allgemeinen so klein, daß man sie erst bei stärkerer Vergrößerung erkennen kann. Ihr mittlerer Querdurchmesser pflegt nämlich nur ein Hundertstel bis ein Zehntel Millimeter zu betragen. Infolgedessen wurden die Zellen erst spät, in der Neuzeit, entdeckt. Hier und da freilich werden Zellen auch viel größer; manche an besondere Funktionen angepaßte faserförmige Zellen (Sklerenchymfasern) werden bis zu 20 cm, Milchröhren sogar meterlang.
Das wichtigste an diesen Zellen ist ein Teil ihres Inhaltes, der Zellenleib oder Protoplast. Er ist nämlich der eigentlich lebende Teil der Zelle. Deshalb denkt man bei dem Begriff Zelle heutzutage mehr an ihn als an das Gehäuse, das zudem vielen „nackten Zellen“ ganz fehlt. In toten Zellen findet man freilich nur noch Reste der Zellleiber, die aber auch vollständig geschwunden sein können; alsdann enthalten die Zellräume nur Wasser oder Luft. Ihre Bedeutung für den Pflanzenkörper brauchen die Zellen mit dem Tode der Protoplasten aber nicht einzubüßen, ja ohne tote Zellen könnte ein höher organisiertes Gewächs nicht auskommen; denn solche Zellen bilden z. B. seine Wasserbahnen und tragen zu seiner mechanischen Festigung bei.
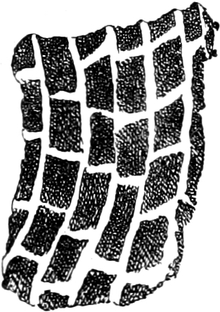
Fig. 1. HOOKES Bild des Flaschenkorkes, von ihm als Schematism or Texture of Cork bezeichnet; vgl. dazu die Fig. 58.
Die Entdeckung der Zellräume glückte bei den Pflanzen früher als bei den Tieren; sie wurde dort durch die Zellhäute erleichtert. Ihr Entdecker, der englische Mikrograph ROBERT HOOKE, nannte sie Zellen wegen ihrer Ähnlichkeit mit den Zellen der Bienenwaben und bildete sie in seiner Mikrographie 1667 zum ersten Male ab (Fig. 1). Die eigentlichen Begründer der pflanzlichen Histologie sind aber der Italiener MARCELLO MALPIGHI und der Engländer NEHEMIAH GREW, deren Werke kurz nacheinander von 1671 an, also wenige Jahre nach HOOKES Mikrographie, erschienen. Der lebende Inhalt der Zellen, der Zellenleib, wurde in seiner Bedeutung nicht vor der Mitte des vorigen Jahrhunderts erkannt. Alsdann erst wandte man sich auch eingehend seiner näheren Untersuchung zu, die u. a. SCHLEIDEN, HUGO V. MOHL, NÄGELI, FERDINAND COHN und MAX SCHULTZE anbahnten und besonders STRASBURGER förderte.
II. Der lebende Inhalt der Zellen (der Protoplast)[6].
A. Bestandteile des Protoplasten. Untersuchen wir bei starker Vergrößerung zarte Längsschnitte durch die äußerste Stengelspitze einer Samenpflanze, so finden wir, daß sie sich aus annähernd rechteckig begrenzten Zellen zusammensetzen (Fig. 2), die mit Inhalt dicht angefüllt und durch zarte strukturlose Wände, die Zellhäute, voneinander getrennt sind. Die Zellen sind hier annähernd würfelförmig oder prismatisch, weshalb sie eben im Schnitte als Quadrate oder Rechtecke erscheinen.
Im Inhalte jeder Zelle fällt ein runder Körper (k) von Kugel- oder Eiform besonders auf, der einen großen Teil des Zellraums ausfüllt: der Zellkern (Kern, Nucleus). Die feinkörnige Masse, die den Raum zwischen Zellkern (k) und Zellwand (m) einnimmt, bezeichnet man als Zytoplasma (pl) oder Plasma. Um den Zellkern herum findet man, in dem Zytoplasma verteilt, stark lichtbrechende, farblose Körperchen, die Plastiden oder Chromatophoren (ch). Zellkern, Plasma und Chromatophoren sind die lebenden Inhaltsbestandteile der Zelle; sie zusammen bilden das Protoplasma, den lebenden Zellenleib oder Protoplasten. Zellkern und Chromatophoren, die stets im Plasma eingebettet sind, kann man als Organe des Protoplasten ansehen, denen besondere Lebensverrichtungen zukommen. Freilich kennen wir die besonderen Funktionen des Kernes noch nicht; wir wissen nur, daß zur Erhaltung des Lebens der Zelle eine Wechselwirkung zwischen Kern und Plasma notwendig ist. Doch ist es für die niedersten Gewächse, Spaltalgen (Cyanophyceen) und Bakterien, noch immer eine ungelöste Frage, ob bei ihnen eine solche Arbeitsteilung im Protoplasten, d. h. ob bei ihnen ein Zellkern vorkommt[7]. Im Protoplasma der Bakterien fehlen auch die Chromatophoren, ebenso in den Zellen der Pilze und in denen der Tiere.
Dagegen hat man in tierischen Zellen in unmittelbarer Nähe des Kerns noch kleine lebende Gebilde, die Zentriolen, als Bestandteile des Protoplasten nachgewiesen. Ähnliche Gebilde kommen im Pflanzenreiche fast nur in Zellen von Kryptogamen vor, ohne aber allgemeine Verbreitung zu besitzen (Fig. 21 A).
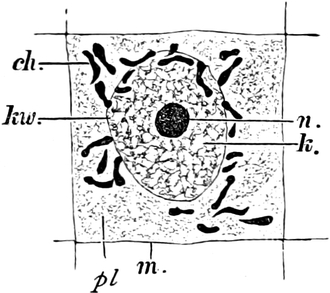
Fig. 2. Embryonale Zelle aus der Wurzelspitze des Hafers. k Zellkern, kw Kernwandung, n Kernkörperchen, pl Plasma, ch Chromatophoren, m Zellwandung. Etwas schematisiert. Vergr. ca. 1500. Nach LEWITSKY.
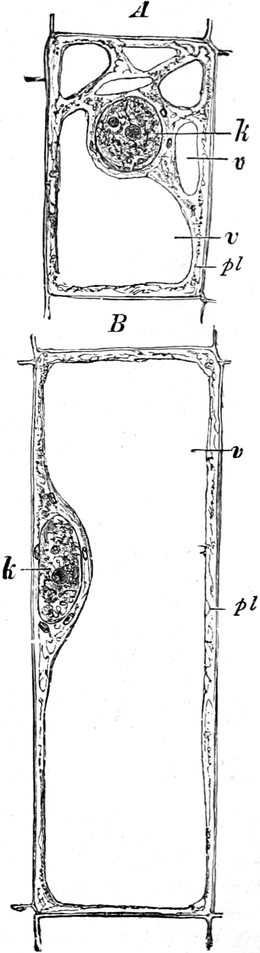
Fig. 3. Zwei Zellen der Stengelspitze einer Samenpflanze, in verschiedener Entfernung von ihrem obersten Ende entnommen. k Kern, pl Plasma, v Vakuolen (Safträume). Etwas schematisiert. Vergr. ca. 500. Nach STRASBURGER.
Bei den Pflanzen sind nur die embryonalen Zellen, wie man sie z. B. an den äußersten Stengel- und Wurzelspitzen findet, in der eben beschriebenen Weise mit Protoplasma dicht gefüllt. Das ist dagegen nicht der Fall in den ausgebildeten Körperzellen (Dauerzellen), die durch Größenwachstum und mannigfaltige Formveränderungen aus jenen hervorgehen. Während dieser Umwandlung zu Dauerzellen sieht man nämlich die embryonalen Zellen bei den Pflanzen, aber nicht bei den Tieren, immer plasmaärmer werden, weil das Plasma während der Vergrößerung der Zellräume nicht wesentlich vermehrt wird. Diese Umwandlung läßt sich an jedem Längsschnitt durch eine Stengelspitze verfolgen. In einiger Entfernung von seinem oberen Ende enthalten die heranwachsenden Zellen in ihrem Plasma bereits eine größere Anzahl Hohlräume, Vakuolen (v in A Fig. 3), die mit wäßrigem Saft, Zellsaft, gefüllt sind. Die Zellen fahren alsdann noch fort, an Größe zuzunehmen, wobei die Vakuolen verschmelzen. Schließlich wird meist ein Zustand erreicht, wo nur noch ein einziger, großer, mit Zellsaft gefüllter Hohlraum, der Saftraum (v in B Fig. 3), im Plasma der Zelle besteht, das Plasma aber nur einen dünnen Belag an der Zellwandung bildet, in dem auch der alsdann wandständige Kern eingebettet ist (Fig. 3 B k). Der Saftraum kann aber auch in einer ausgewachsenen Zelle von Lamellen und Strängen oder Fäden aus Plasma durchsetzt bleiben, worin oft der Kern, aber stets vom Plasma allseitig umhüllt, aufgehängt ist (Fig. 5, 10). In jeder noch lebenden Zelle ist die Zellwandung auf ihrer Innenseite von einem ununterbrochenen Plasmabelag ausgekleidet, der der Zellwand überall dicht anliegt, in älteren Zellen aber so dünn werden kann, daß man ihn nicht unmittelbar sieht (Fig. 10). Erst wasserentziehende Mittel, die ihn veranlassen, sich von der Zellwandung zurückzuziehen und abzulösen (Plasmolyse, vgl. S. 192), wie etwa stärker konzentrierte Salz- oder Zuckerlösungen, machen ihn alsdann sichtbar.
B. Physikalische Eigenschaften des Protoplasten. Um die physikalischen Eigenschaften, insbesondere den Aggregatzustand, des Protoplasmas kennen zu lernen, wenden wir uns zunächst zu einer Gruppe von Organismen, die an der Grenze zwischen dem Pflanzen- und dem Tierreiche stehen, zu den Schleimpilzen oder Myxomyceten. Sie sind durch einen Entwicklungszustand ausgezeichnet, während dessen ihr Protoplasma größere nackte Massen, die Plasmodien, bildet. Ihr Plasma (Fig. 4) besteht aus netzartig verbundenen, dickeren und dünneren Strängen einer glashellen Grundmasse, die Körnchen enthält und zäh- oder dünnflüssig ist. In diesen Strängen sieht man nämlich das Plasma innerhalb von festeren und dichteren ruhenden Hüllschichten lebhaft nach Art einer Flüssigkeit strömen. Diese inneren Ströme bewegen sich nach den Rändern des Plasmodiums hin oder von ihnen hinweg und wechseln häufig ihre Richtung. An den Rändern des Plasmodiums selbst werden Plasmafortsätze vorgestreckt oder schon vorhandene eingezogen. Dadurch kann das Plasmodium sich kriechend fortbewegen. Wo solche Protoplasmamassen fremden Körpern begegnen, sind sie befähigt, sie in ihr Inneres aufzunehmen, in Vakuolen einzuschließen und, soweit das möglich ist, auch zu verdauen.
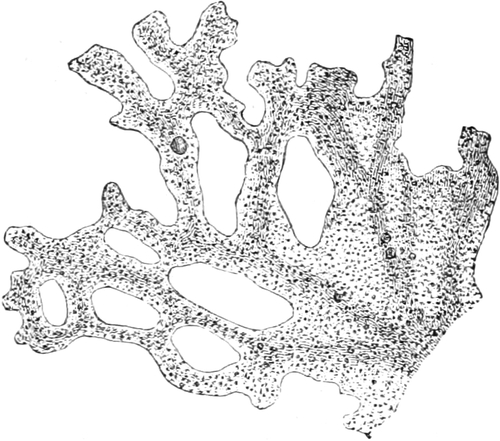
Fig. 4. Teil eines ausgewachsenen Plasmodiums von Chondrioderma difforme. Vergr. 90. Nach STRASBURGER.
Wie in den nackten Plasmodien der Schleimpilze, so läßt sich auch bei behäuteten pflanzlichen Zellen oft strömende Bewegung im Plasma erkennen, solange es lebt. Meist stellt sie sich erst in annähernd fertigen Dauerzellen, und zwar vielfach nur dann in auffälliger Weise ein, wenn durch eine Verwundung, etwa das Schneiden bei Herstellung des Präparats, ein Reiz auf die Protoplasten ausgeübt worden ist[8]. Sie scheint den Transport von Nährstoffen nach der Wundstelle zu beschleunigen. Schon an diesen Bewegungen kann man sehen, daß auch hier das Protoplasma meist eine dünn- oder zähflüssige Masse ist; aus seiner Hülle befreit, nimmt es dementsprechend die Form eines runden Tropfens an. In behäuteten Zellen, in denen solche Plasmabewegung vorkommt, sieht man das Protoplasma, abgesehen von seiner stets ruhenden äußersten Schicht, die an die Zellwand angrenzt, entweder in einem einzigen Strome von konstanter Richtung oder in verschiedenen Strömen mit wechselnder Richtung sich bewegen. Man hat danach zwischen Rotation und Zirkulation des Plasmas unterschieden. In den Zellen, in denen Rotationsbewegung vorkommt, z. B. bei vielen Wasserpflanzen, ist das Protoplasma auf einen Wandbelag beschränkt. Der Rotationsstrom folgt der Zellwandung und beschreibt eine kreisende, in sich zurücklaufende Bahn. Die bei Landpflanzen häufige Zirkulation findet sich besonders in Zellen, deren Innenräume von Plasmasträngen oder -lamellen durchsetzt sind; das Plasma strömt in ihnen außerdem in bandförmigen, meist verzweigten Streifen des Wandbelages, und zwar hier wie dort nach verschiedenen Richtungen hin.
Von dem in Rotation befindlichen Plasma werden Zellkern und Chromatophoren meist mitgeführt. Doch können letztere an der ruhenden peripheren Schicht haften und infolgedessen unbeweglich sein. So ist es beispielsweise bei den Characeen, Süßwasseralgen, deren lange Gliederzellen in der Gattung Nitella besonders günstige Beispiele für die Beobachtung starker Rotationsströmung sind. Ein sehr gutes Objekt für das Studium der Zirkulation sind die Staubblatthaare von Tradescantia virginica (Fig. 5). Die den Saftraum durchsetzenden Plasmastränge verändern dabei langsam ihre Gestalt und Lage und veranlassen dadurch auch Lageänderungen des Kerns.
Bewegungen an eng umgrenzten Stellen des Plasmas beobachtet man auch in den Protoplasten vieler niederer Algen, besonders ihrer Schwärmzellen: In der Nähe des vorderen Körperendes umschließt das Plasma eine oder mehrere kleine pulsierende Vakuolen, die in kürzeren Zeitabschnitten rhythmisch verschwinden, d. h. plötzlich sich entleeren, darauf aber wieder erscheinen und langsam zur alten Größe heranwachsen (Fig. 335 1 v). Ferner besitzt ihr Plasmakörper einen oder mehrere fadenförmige, kontraktile, plasmatische Fortsätze, Geißeln, Zilien, die sehr lebhaft schwingen und die Bewegungsorgane der Schwärmzellen sind.
Der Protoplast ist nur innerhalb ziemlich enger Temperaturgrenzen aktiv lebenstätig (also auch strömungsfähig) und innerhalb etwas weiterer lebensfähig. Er stirbt, d. h. gerinnt, erstarrt in der Regel rasch bei Temperaturen, die nicht weit über +50° liegen. Auch durch Alkohol, durch Säuren von bestimmter Konzentration, durch Lösungen von Sublimat und vielen anderen Schwermetallsalzen wird das Protoplasma zum raschen Erstarren gebracht, fixiert. Solche Gerinnungs- und Fixierungsmittel spielen jetzt eine große Rolle in der mikroskopischen Technik[9].
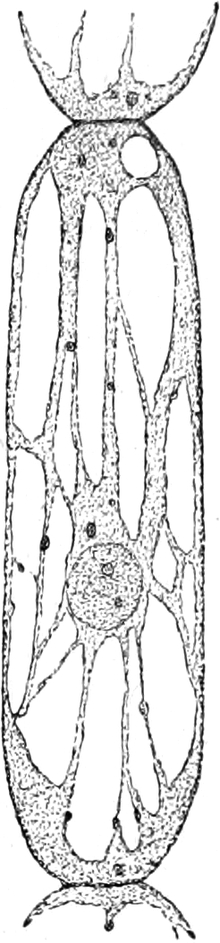
Fig. 5. Eine Zelle aus einem Staubblatthaare von Tradescantia virginica. Innerhalb der Stränge als dunkle Körner Leukoplasten und der runde Zellkern. Vergr. 240. Nach STRASBURGER.
C. Chemische Eigenschaften des Protoplasten[10]. Das in Tätigkeit befindliche Protoplasma reagiert gewöhnlich alkalisch, unter Umständen auch neutral, niemals aber sauer. Es ist nicht ein einheitlicher chemischer Körper, sondern besteht aus einem Gemische einer großen Zahl chemischer Verbindungen, die zum Teil in Wasser gelöst, zum Teil fest sind. Ein Teil davon erfährt im aktiv lebenstätigen Protoplasma fortdauernd Veränderungen, auf denen ohne Zweifel viele wichtige Lebensäußerungen des Protoplasten beruhen. Die wichtigsten Bestandteile in diesem Gemische sind wohl die Eiweißkörper (Eiweißstoffe, Proteïne, und Eiweißverbindungen, Proteïde). So gibt das Protoplasma Eiweißreaktion und läßt beim Verbrennen infolge seines Stickstoffgehaltes Ammoniakdämpfe entweichen. Und zwar ist in dem Protoplasma eine ganze Reihe von Eiweißstoffen aufgefunden worden. Im Zellkerne herrschen die Nukleoproteïde, phosphorhaltige Eiweißverbindungen, vor, die von Pepsinlösung nicht aufgelöst werden. Weiter enthält das Protoplasma wohl stets Spaltungsprodukte der Eiweiße, vor allem Amide; außerdem Enzyme, Kohlehydrate und ölartige Körper (Lipoide), wie Fette und Lezithine (vgl. S. 222); ferner Phytosterine (aromatische Alkohole von der Formel C27H45OH) und unter Umständen Alkaloide (heterozyklische, stickstoffhaltige Pflanzenbasen) oder Glykoside (esterartige Verbindungen der Zucker meist mit aromatischen Verbindungen). Daß auch Mineralstoffe im Protoplasma nicht völlig fehlen, geht daraus hervor, daß es Asche hinterläßt.
Durch verdünnte Kalilauge werden alle Teile des Protoplasten gelöst, ebenso durch Chloralhydrat oder JAVELLEsche Lauge. Durch Jod werden sie bräunlichgelb gefärbt, durch eine Lösung von salpetersaurem Quecksilberoxydul (dem sog. MILLONschen Reagens) ziegelrot. Die Reagenzien töten das Protoplasma, worauf sich erst die charakteristische Reaktion einstellt. Diese Reaktionen weisen auf Eiweißkörper hin, sind ihnen aber nicht ausschließlich eigen.
D. Bau der Teile des Protoplasten. Sehr wichtige Hilfsmittel für die Erforschung der Teile des Protoplasten bilden die Fixierungs- und Färbeverfahren. Gewisse Gerinnungsmittel fixieren und härten nämlich das Protoplasma anscheinend wenig verändert. Man hat aber stets darauf zu achten, daß bei der Fixierung auch Strukturen auftreten, die erst durch die Gerinnung entstehen[11].
Der Wert der Färbungen beruht darauf, daß die verschiedenen Bestandteile des Protoplasmas mit ungleicher Begierde Farbstoffe aufnehmen und mit größerer oder geringerer Kraft festhalten, wenn man ihnen die Stoffe durch Lösungsmittel wieder zu entziehen sucht. Viele Farbstoffe werden erst vom toten Protoplasma merklich gespeichert. Zur Färbung der fixierten pflanzlichen Protoplasten bedient man sich vornehmlich der Karminlösungen, des Hämatoxylins, Safranins, Säurefuchsins, Gentianavioletts, Orange, Methylenblaus u. a.
1. Das Plasma (Zytoplasma). In einer anscheinend glasklaren, also optisch homogenen, dünn- oder zähflüssigen Grundmasse des Plasmas, dem Hyaloplasma, sieht man bei stärkeren Vergrößerungen gewöhnlich winzig kleine Körnchen und Tröpfchen in kleinerer oder meist größerer Zahl, die Mikrosomen, eingebettet, die offenbar aus verschiedenartigen Stoffwechselprodukten des Plasmas bestehen. Körnerreiches Plasma bezeichnet man wohl als Körner- oder Polioplasma. Das Hyaloplasma, das selbst mit dem Ultramikroskop optisch nahezu leer erscheint, ist eine wäßrige Lösung der Art, die die physikalische Chemie kolloidale Lösungen oder Sole nennt[12]. Der Nachweis, daß das Protoplasma meist eine kolloidale Lösung, und zwar ein Emulsoid, ist, hat, wie es scheint, grundlegende Bedeutung. Dadurch dürften viele Lebensäußerungen des Plasmas einer physikalisch-chemischen Erklärung zugänglich werden.
An seiner Peripherie ist das Plasma von einer äußerst dünnen, körnchenfreien und oft zäheren Hyaloplasmaschicht umgeben, deren äußerster Saum, die Hautschicht oder Plasmahaut, seine eigentliche äußere Begrenzung bildet. Gegen den Saftraum und andere Vakuolen grenzt es sich ebenfalls durch solche Hyaloplasmaschichten und Plasmasäume, die Vakuolenwände, ab. Diese peripheren Hautschichten und die Vakuolenwände können sich jederzeit neu bilden, sind aber sehr wichtige Bestandteile des Protoplasten; denn sie entscheiden über die Aufnahme von Stoffen in das Protoplasma. Sie sind semipermeabel; d. h. lassen zwar Wasser durch, sind aber für viele andere Stoffe undurchlässig oder schwer durchlässig.
Ob das lebende Plasma außer der Emulsionsstruktur stets noch eine andere bestimmte und bezeichnende, aber mit dem Mikroskope und Ultramikroskope unsichtbare Struktur besitzt, wissen wir nicht. In sich teilenden Protoplasten treten fadenförmige Sonderungen auf, die in ruhenden Protoplasten wieder unkenntlich werden. Plasma, das fixiert und gefärbt wurde, kann homogen sein oder bildet (bei schlechter Fixierung), wie andere geronnene kolloidale Lösungen, ein Netz-, Gerüst- oder Wabenwerk, in das Körnchen eingelagert sind.
Außer solchen Strukturen sind aber neuerdings im Plasma von embryonalen und Dauerzellen, vor allem nach besonderem Fixierungs- und Färbungsverfahren, noch korn-, stäbchen-, faden-, spindel- oder hantelförmige Gebilde nachgewiesen worden, die in ihrem Aussehen und in ihrem Verhalten gegenüber den Fixierungs- und Färbungsmitteln so sehr mit den Chondriosomen (Mitochondrien) embryonaler tierischer Zellen übereinstimmen, daß man diese Bezeichnung auf sie ausgedehnt hat[13]. Wahrscheinlich sind es verschiedenwertige Dinge, zum Teil kleine, an besonderen, vielleicht nukleïnsäurehaltigen Eiweißkörpern reiche Vakuolen, zum Teil fadenförmige Plasmastränge, zum Teil auch jugendliche Chromatophoren; man hat sie auch bei Pilzen beobachtet und bei gewissen Moosen in den embryonalen Zellen neben den Chromatophoren.
2. Der Zellkern (Nukleus)[14] ist im allgemeinen kugel-, ei- oder linsenförmig gestaltet, kann aber manchmal auch absonderliche, z. B. gelappte Gestalt annehmen oder in gestreckten Zellen selbst fadenförmig werden. In embryonalen Zellen beträgt sein Durchmesser etwa zwei Drittel des Gesamtdurchmessers des Protoplasten. In ausgewachsenen Dauerzellen dagegen macht er, da er nicht mitwächst, in dem größeren Zellraume einen viel kleineren Eindruck. Große Kerne findet man bei den meisten Koniferen und manchen Monokotylen, sowie bei Ranunculaceen und Loranthaceen unter den Dikotylen. Mit besonders großen Kernen sind meist Drüsenzellen ausgestattet. Dagegen sind die Kerne der meisten Pilze (Fig. 6) und vieler Schlauchalgen sehr klein.

Fig. 6. Mehr-(5) kernige Zelle des Pilzes Hypholoma fasciculare. Vergr. 500. Nach KNIEP.
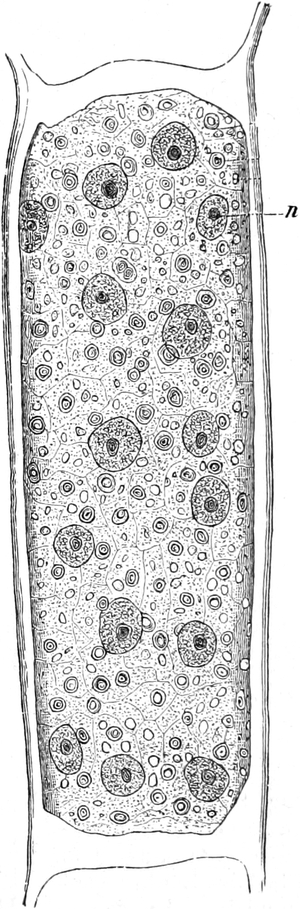
Fig. 7. Eine Zelle von Cladophora glomerata, nach einem mit 1%iger Chromsäure fixierten und mit Karmin gefärbten Präparate. n Kerne. Vergr. 540. Nach STRASBURGER.
Bei höheren Pflanzen kommen fast ausschließlich einkernige Zellen vor. Bei den niederen Pflanzen sind aber vielkernige Zellen sehr verbreitet; ja bei vielen Pilzen (Fig. 6) und bei den Schlauchalgen herrschen sie vor. Der ganze Organismus wird alsdann entweder von einer einzigen solchen vielkernigen Zelle gebildet, die bei einigen Schlauchalgen, wie Caulerpa, äußerlich ungewöhnlich reich gegliedert ist (Fig. 348); oder er besteht aus einer größeren Zahl vielkerniger Zellen, so bei vielen Pilzen (Fig. 6) und z. B. bei der Süßwasseralge Cladophora (Fig. 7).
Der Zellkern sieht, solange er lebt, fein punktiert aus. Außerdem fallen in ihm meist ein bis mehrere größere, runde, glänzende Körner oder Tropfen auf: die aus Eiweißkörpern bestehenden Kernkörperchen oder Nukleolen (Fig. 2 n), deren Bedeutung wir noch nicht genau kennen. Der Kern, dessen Inhalt zähflüssig zu sein scheint, ist von einer Kernwandung umgeben (Fig. 2 kw), einer Hautschicht, mit der der Kernraum, die Kernhöhle, gegen das umgebende Plasma abgegrenzt ist.
Einen Einblick in die feinere Kernstruktur erhält man nur an entsprechend fixierten und gefärbten Präparaten. Man erkennt alsdann im Kern meist ein stark gefärbtes wabig-netzartiges Gerüstwerk oder Körner aus Chromatin (Fig. 13, 1 n), das vornehmlich aus phosphorhaltigen Eiweißverbindungen (und zwar Nukleoproteïden) zu bestehen scheint. In den Maschen des Gerüstes befinden sich die Nukleolen, die sich ebenfalls intensiv, jedoch meist anders als das Chromatin färben, weil sie meist nicht aus Chromatin bestehen. Das Gerüstwerk und die Nukleolen des Kerns liegen innerhalb der Kernhöhle, die mit Kernsaft, wohl einer Eiweißlösung, gefüllt ist.
In vielen Kernen scheint das Kerngerüst aus einer wenig färbbaren Grundmasse, dem Linin, gebildet zu werden, dem das Chromatin als kleine Körnchen eingelagert ist.
Bei Spirogyra unter den Algen, gewissen Flagellaten und Pilzen enthalten vielleicht auch die Kernkörperchen einen Teil des Chromatins, sind also denen der höheren Pflanzen nicht gleichwertig, wie auch ihr Anteil an den Kernteilungsvorgängen zeigt[15]. Solche Kerne werden wohl auch als Karyosomkerne bezeichnet.
Welchen Anteil der Zellkern an den Lebenserscheinungen des Protoplasten hat, ist noch ganz unbekannt; jedenfalls aber ist er zum Bestande des Lebens in kernhaltigen Zellen nötig. Sehr große Bedeutung hat er als hauptsächlicher Träger der erblichen Anlagen.
3. Die Chromatophoren[16]. In den embryonalen Zellen sind die Chromatophoren kleine, farblose, stark lichtbrechende Gebilde von Tropfen-, Körner-, Spindel- oder Fadenform, die sich vornehmlich in der Nähe des Zellkerns (Fig. 2 ch) aufhalten. In Dauerzellen sind sie meist zu Chloroplasten, Leukoplasten oder Chromoplasten umgebildet, die man wegen dieses gleichen Ursprunges ebenfalls Chromatophoren nennen kann.
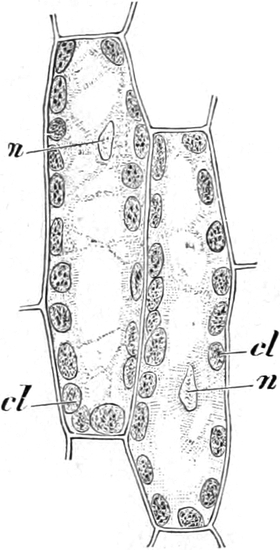
Fig. 8. Zwei Zellen mit Chlorophyllkörnern (cl) aus dem Blatt des Laubmooses Funaria hygrometrica. n Zellkerne. Vergr. 300. Nach SCHENCK.
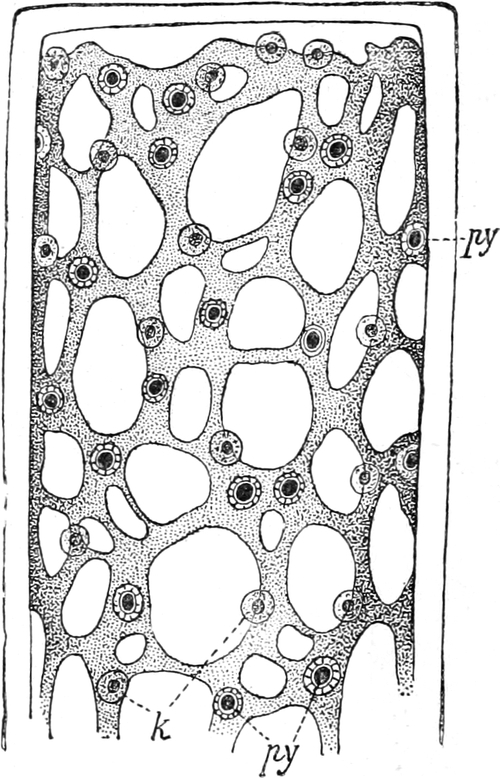
Fig. 9. Netzförmiger Chlorophyllkörper der Süßwasseralge Cladophora arcta mit py Pyrenoïden, k Kerne. Nach SCHMITZ.
a) Chloroplasten. In peripherischen, dem Lichte ausgesetzten Teilen der Pflanze gehen aus den Chromatophoren der embryonalen Zellen in der Regel grüne Chloroplasten oder Chlorophyllkörper hervor. Ihnen verdanken die grünen Pflanzen ihre Farbe und auch ihre Befähigung zur Kohlensäureassimilation. Die Chloroplasten liegen immer im Plasma, meist im plasmatischen Wandbelage der Zellen, und besitzen bei allen höher organisierten Pflanzen die Gestalt ellipsoidischer, etwas abgeflachter Körner (Fig. 8 cl) Chlorophyllkörner. Bei den Algen sind die Chlorophyllkörper aber oft anders gestaltet, nämlich bandförmig (Fig. 329 C), sternförmig oder plattenförmig, häufig auch netzartig durchbrochen (z. B. Cladophora Fig. 9). Alsdann sind ihnen meist Pyrenoïde (Fig. 9 py) ein- oder angelagert: runde Proteïnkörper, die in bestimmten Fällen einen Eiweißkristall enthalten und mit kleinen schalenförmigen Stärkekörnern sich umhüllen, weshalb die Pyrenoïde auch Stärkeherde genannt werden. Nach längerer Belichtung findet man in den Chloroplasten der meisten Pflanzen eine geringere oder größere Zahl sehr kleiner Stärkekörnchen (Assimilationsstärke Fig. 15) und außerdem oft ölartige Tröpfchen, die vielleicht aus Aldehyden bestehen. Die Grundmasse der Chloroplasten läßt aber eine feinere Struktur in lebensfrischem Zustande selbst bei den stärksten Vergrößerungen nicht erkennen; sie ist gleichmäßig grün gefärbt.
Der grüne Farbstoff, das Chlorophyll, ist für die Kohlensäurezerlegung in den Chloroplasten unentbehrlich.
Die Untersuchungen aus letzter Zeit[17], namentlich von WILLSTÄTTER und seinen Schülern, haben ergeben, daß in den Chloroplasten im ganzen vier Farbstoffe vorhanden sind: Zwei sehr nahe verwandte grüne Pigmente, das Chlorophyll a und b, im Mengenverhältnis von etwa 3 : 1, und, in wesentlich geringerer Menge, zwei gelbe Farbstoffe. Die Chlorophylle sind Ester des Phytols, eines Alkohols von der Formel C20H39OH, und einer Trikarbonsäure, also hochmolekulare Verbindungen von Kohlenstoff, Sauerstoff und Wasserstoff, in deren Aufbau noch Stickstoff und Magnesium, entgegen früheren Annahmen aber kein Phosphor und kein Eisen eingeht. Das blaugrüne Chlorophyll a entspricht der Formel C55H72O5N4Mg + 1⁄2 H2O; das gelbgrüne Chlorophyll b hat die Zusammensetzung C55H70O6N4Mg. Die gelben Pigmente sind orangerote, kristallisierende Karotine (Kohlenwasserstoffe von der Zusammensetzung C40H56), von denen eines z. B. auch in den Möhrenwurzeln vorkommt, und gelbe, ebenfalls kristallisierbare Xanthophylle (Oxyde der Karotine: C40H56O2). An der Assimilation der Kohlensäure sind aber nur die Chlorophylle beteiligt.
Alle vier Farbstoffe lassen sich aus den frischen oder getrockneten Chloroplasten mit verschiedenen Lösungsmitteln ausziehen, z. B. mit Azeton oder 80–90% Alkohol; am schnellsten kann man eine intensive Lösung aller Pigmente aus frischen Laubblättern erhalten, wenn man sie mit siedendem Alkohol übergießt. Solche Lösungen sind infolge des Gehaltes an Chlorophyllen im durchfallenden Lichte smaragdgrün, bei auffallendem Lichte durch Fluoreszenz blutrot[18]. Ihr Spektrum (Fig. 245) ist durch vier Absorptionsbänder im weniger brechbaren (roten) Teile und drei im stärker gebrochenen (blauen) ausgezeichnet. Die einzelnen Pigmente lassen sich durch Ausschütteln dieser Lösungen voneinander trennen. Wird z. B. die alkoholische Lösung mit Benzol geschüttelt, so nimmt dieses die Chlorophylle auf und sammelt sich als grüne Lösung über dem nun gelb gefärbten Alkohol an. Die Menge des in grünen Pflanzenteilen vorhandenen Chlorophyllgrüns ist nur gering; sie macht nach WILLSTÄTTER 0,5–1% der Trockensubstanz aus.
Bei manchen viel kultivierten Gewächsformen, den weißbunten (panaschierten) Pflanzen, haben kleinere oder größere Teile der Blätter nicht grüne, sondern weiße oder gelbliche Färbung; ihre Zellen enthalten an Stelle der grünen Chloroplasten farblose oder gelbliche Chromatophoren.
Viele Algen sind nicht grün, sondern anders gefärbt. In den blaugrünen, spangrünen, blauen, seltener violetten Spaltalgen und in den roten, violetten oder rotbraunen Chloroplasten der Rotalgen sind nämlich neben den vier Farbstoffen der grünen Chlorophyllkörper auch noch ein blauer Farbstoff, das Phykozyan, und ein roter, das Phykoerythrin, allein oder seltener nebeneinander vorhanden. Beide sind nach Abtötung der Zellen schon in Wasser löslich, dem ein wenig Alkali oder Neutralsalz zugesetzt ist, und fluoreszieren sehr schön. Um Spaltalgen, die man auf Papier trocknet, bildet das Phykozyan oft einen blauen Saum. Beide Farbstoffe sollen Proteïde sein. Über ihre Bedeutung ist wenig Sicheres bekannt[19]. Bei den Braunalgen kommt die Farbe der braunen oder gelben Chloroplasten dadurch zustande, daß in ihnen außer Chlorophyll a und sehr wenig Chlorophyll b etwa gleich viel gelbe Farbstoffe, nämlich Karotin, Xanthophyll und außerdem in überwiegender Menge auch noch das dem letzten verwandte rotbraune Phykoxanthin (C40H54O6), vorhanden sind[20].
Die Verfärbungen[21], die die Blätter unserer Holzgewächse im Herbste vor dem Blattfall erfahren, sind mit einer Zersetzung der Chloroplasten und des Chlorophyllfarbstoffes verbunden. In den Protoplasten findet man alsdann außer wäßriger, oft rotgefärbter Flüssigkeit nur noch einige Öltröpfchen, Kristalle und gelbe, stark lichtbrechende Kugeln. Anders steht es bei solchen Nadelhölzern, deren Blätter im Winter sich bräunen, um im nächsten Frühjahr wieder zu ergrünen; hier gehen in den Farbstoffen der Chloroplasten Umwandlungen vor, die im Frühling wieder rückgängig gemacht werden. Die Bräunung absterbender Laubblätter ist eine postmortale Erscheinung, bei der braune wasserlösliche Farbstoffe auftreten.
In den nicht grünen phanerogamen Schmarotzern werden die Chloroplasten nicht ausgebildet, sondern durch farblose, auch wohl bräunliche oder rötliche Chromatophoren ersetzt, die übrigens bei manchen dieser Gewächse noch Spuren von Chlorophyll enthalten können. Bei den Pilzen fehlen die Chromatophoren ganz, wie schon hervorgehoben wurde.
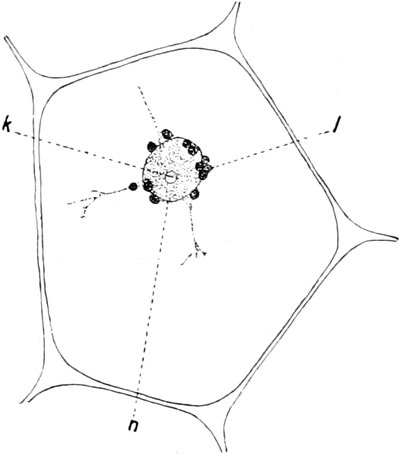
Fig. 10. Zelle aus der Epidermis der Commelinacee Rhoeo discolor. n Kern mit Kernkörperchen k, umgeben von Leukoplasten l. Vom Kern gehen Plasmastränge nach dem unsichtbaren wandständigen Plasmabelag aus. Vergr. 240.
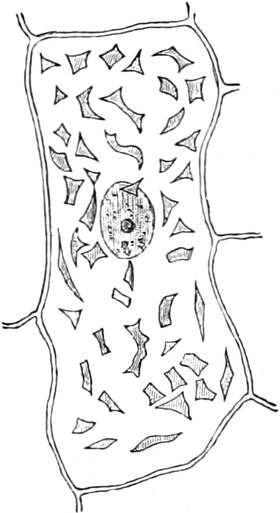
Fig. 11. Zelle mit Chromoplasten von der Oberseite des gelb gefärbten Kelches der Kapuzinerkresse (Tropaeolum majus). Vergr. 540. Nach STRASBURGER.
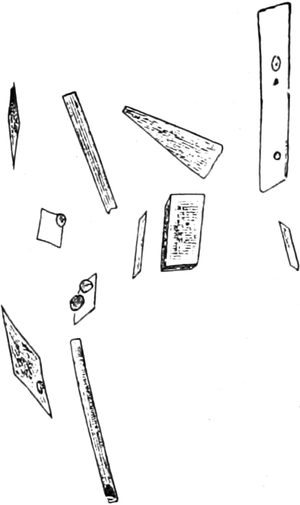
Fig. 12. Chromoplasten aus der Möhrenwurzel, zum Teil mit Stärkeeinschlüssen. Vergr. 540. Nach STRASBURGER.
b) Leukoplasten. In vielen Teilen der Pflanzen, namentlich solchen, zu denen das Licht nicht gelangt, werden die Chromatophoren zu farblosen Leukoplasten. Sie sind in vielen Zellen winzig klein (Fig. 5, 10 l), kugelig, eiförmig oder nicht selten durch einen eingeschlossenen Eiweißkristall gestreckt (Fig. 28 B kr). Dem Lichte ausgesetzt wandeln sie sich häufig in Chloroplasten um, so in den äußeren Partien belichteter Kartoffelknollen und in manchen Erdwurzeln. Auch die Leukoplasten haben, wenigstens in vielen Zellen, besondere Funktionen, nämlich die, Zucker in Stärke umzuwandeln, die in ihnen als Körner auftritt, weshalb man die Leukoplasten auch als Stärkebildner bezeichnet.
c) Chromoplasten gehen entweder direkt aus den farblosen Chromatophoren der Embryonalzellen oder aus zuvor ausgebildeten Chloroplasten hervor und bedingen die gelbe und rote Färbung vieler Pflanzenteile, besonders von Blüten und Früchten. Sie können wie die Chloroplasten rundliche Körner sein; doch sind sie oft kleiner und stets gelb oder orangerot gefärbt. Diese Färbung rührt entweder von gelben Xanthophyllen oder von leicht auskristallisierenden, orangeroten Karotinen her. Die Farbstoffe sind nicht gleichmäßig in ihrem Körper gelöst; vielmehr findet man in einer farblosen, plasmatischen Grundsubstanz (dem Stroma) des Chromoplasten viele winzige Tröpfchen (Grana) davon[22]. Die Farbstoffe, namentlich die Karotine, kristallisieren aber auch oft aus; alsdann sind die Chromoplasten nadelförmig oder zu dreieckigen oder rhombischen Plättchen gestreckt (Fig. 11, 12).
Nach Herkunft und Bedeutung noch nicht genügend bekannt ist der rote Augenfleck, den man in den Zellen vieler Algen, besonders in ihren Schwärmzellen, neben dem Chloroplasten und meist mit ihm verbunden findet (Fig. 335 1 a). Manche Forscher glauben, daß er als Chromoplast aufzufassen ist und zur Wahrnehmung des Lichtes, gewissermaßen als Auge, dient. Der rote Farbstoff, Hämatochrom genannt, ist nichts anderes als Karotin.
E. Ursprung der Elemente des Protoplasten[6]. Alle lebenden Elemente des Protoplasten, das Plasma, die Zellkerne und die Chromatophoren, stammen ab von gleichnamigen Elementen; eine freie Neubildung findet nirgends statt. Sie nehmen an Masse zu durch Wachstum; sie vermehren sich aber an Zahl, ebenso wie die Protoplasten selbst, nur durch Teilung oder Abspaltung aus ihresgleichen. Dadurch werden die Eigenschaften der lebenden Bestandteile einer Keimzelle auf alle Zellen des Organismus, so auch wieder auf seine Keimzellen übertragen, und die ununterbrochene Fortdauer des Lebens bleibt erhalten. Die Teilung der Protoplasten wird gewöhnlich eingeleitet durch die Kernteilung. Das Ineinandergreifen der Kern- und Zellteilung in einkernigen Zellen ist notwendig, um jeder Tochterzelle einen Kern zu sichern. In vielkernigen Zellen (z. B. von Algen und Pilzen) ist es nicht notwendig, wenn die Querwand so angelegt wird, daß jedem Tochterprotoplasten die nötigen Kerne ohnedies bei der Teilung zufallen; tatsächlich ist hier oft die Zellteilung nicht von der Kernteilung abhängig.
Es kommt übrigens vor, daß der Protoplast einer Zelle als Ganzes ohne Teilung seine alte Zellhülle aufgibt. Dieser Vorgang, Zellverjüngung genannt, hat mit Zellteilung nichts zu tun.
Solche Zellverjüngung liegt z. B. vor, wenn in der grünen Alge Oedogonium der Protoplast sich abrundet und aus einer Öffnung der alten Zellhaut als nackte Schwärmspore heraustritt, oder wenn die Protoplasten der Sporen von Moosen oder Farnen und der Pollenkörner von Samenpflanzen innerhalb ihrer Zellhäute sich mit neuen Membranen umgeben und mit diesen neuen Hüllen selbständig werden, während die ursprünglichen Zellwände der Zerstörung anheimfallen.
1. Typische Teilung des Protoplasten. a) Kernteilung. Von wenigen Fällen abgesehen vermehren sich die pflanzlichen Zellkerne durch mitotische oder indirekte Teilung, einen Vorgang, der auch als Karyokinese bezeichnet wird. Er spielt sich in ziemlich verwickelter Weise ab und ist vor allem an fixierten und gefärbten Schnitten näher studiert worden.
Indirekte Kernteilung[23]. Sie stimmt in ihren Hauptzügen bei höher organisierten Pflanzen und Tieren überein. Fig. 13 stellt ihre Stadien in etwas schematisierten Bildern so dar, wie sie in embryonalen vegetativen Zellen solcher Pflanzen aufeinander folgen.
Das feine Gerüstwerk des ruhenden Zellkerns aus (Linin und) Chromatin (Fig. 13, 1 n) sehen wir auf einzelne Punkte des Chromatinnetzes sich zusammenziehen (Spiremstadium) und in eine bestimmte Anzahl von fadenartigen Gebilden sich sondern (2 ch), die zunächst unregelmäßig begrenzt sind, aber allmählich dichter werden und nun bestimmte Farbstoffe noch stärker speichern (3, 4). Wir bezeichnen diese fadenförmigen Gebilde des Kerns als Chromosomen. Sie spalten sich längs (5); etwas später werden sie dicker, kürzer und glattrandig (6), worauf sie nach der Mitte der Zelle befördert werden und sich hier zur Kernplatte oder Äquatorialplatte (7 kp), einer sternförmigen Figur (dem Aster), anordnen, die meist in der künftigen Teilungsebene der Zelle liegt (Flächenansicht Fig. 14).
Während das Kerngerüst in die einzelnen Chromosomen sich sondert, legen sich der Kernwandung von außen Plasmafäden an und umgeben sie mit einer faserigen Schicht, die sich mehr und mehr an zwei gegenüberliegenden Seiten der Kernwand sammelt und hier die Polkappen (6 k) bildet. In ihnen neigen die Fasern nach den Endpolen der ganzen Teilungsfigur zusammen, indem sie sich zu zugespitzten Büscheln strecken. Alsdann wird das Kernkörperchen (1 nl) und die Kernwandung (1 w) aufgelöst, worauf die Fasern der Kappen in die Kernhöhle hineinwachsen (7). Sie endigen dort entweder, wie es scheint, an den Chromosomen oder treffen mit den Enden aufeinander und verlaufen dann als ununterbrochene Fäden von einem Pole zum anderen. Hiermit ist die Kernspindel (7 s) aus den Spindelfasern fertiggestellt.
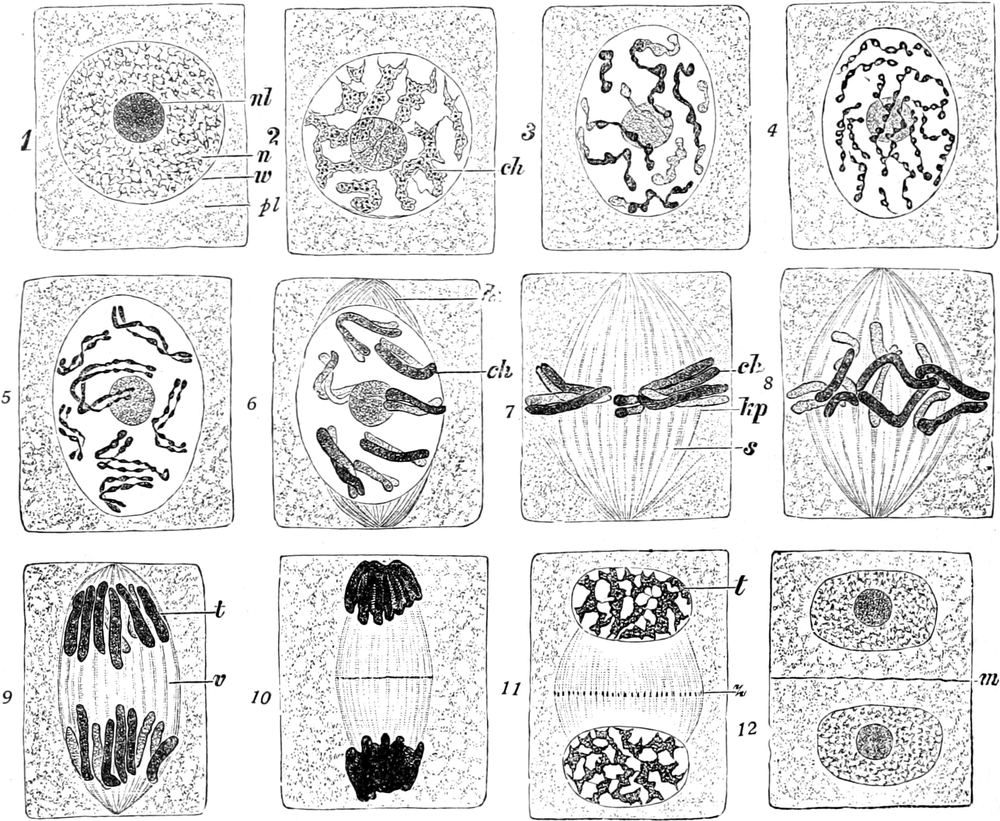
Fig. 13. Aufeinanderfolgende Stadien der Kern- und Zellteilung in einer embryonalen Zelle einer höheren Pflanze. Etwas schematisiert. Als Vorlage dienten Längsschnitte mit Chromosmiumessigsäure fixierter Wurzelspitzen der monokotylen Wasserpflanze Najas marina, nach Färbung mit Eisenhämatoxylin, n Kern, nl Nucleolus, w Kernwandung, pl Plasma, ch Chromosomen, k Polkappen, s Spindel, kp Kernplatte, t Tochterkern, v Verbindungsfäden, z Zellplatte, m neue Scheidewand. Die Chromatophoren sind bei solcher Fixierung und Färbung nicht sichtbar. Vergr. ca. 1000. Nach CLEMENS MÜLLER.
Die beiden Längshälften jedes Chromosoms, die Tochterchromosomen, rücken hierauf in entgegengesetzter Richtung auseinander (8, 9), um die beiden Tochterkerne (10–12 t) zu bilden. Während dieser Wanderung (Diasterfigur) sind die Chromosomen meist U-förmig nach den Polen hin gekrümmt. An den Spindelpolen angelangt, drängen sie sich aneinander. Darauf grenzt sich das umgebende Plasma mit Hautschichten gegen die neuen Kernanlagen ab und bildet ihre Kernwandungen. Innerhalb der Tochterkerne werden die Chromosomen wieder wabig (Dispiremstadium 11) und vereinigen sich miteinander zu einem Gerüstwerk (12), worin ihre Grenzen meist nicht mehr zu erkennen sind, wenn sie auch, wie man annehmen muß, ihre Selbständigkeit nicht einbüßen. Beide Tochterkerne werden dabei größer; es treten auch wieder Nukleolen in Ein- und Mehrzahl in ihnen auf (12).
Durch diesen Teilungsmechanismus ist erreicht, daß die Substanz des Kerns, besonders die der Chromosomen, bei jeder Kernteilung ganz gleichmäßig auf die beiden Tochterkerne, und zwar infolge der Längsspaltung der Chromosomen, so verteilt wird, daß von den einzelnen, in der Längsrichtung aufeinanderfolgenden Chromatinabschnitten eines jeden Chromosoms die eine Hälfte dem einen, die andere Hälfte dem anderen Tochterchromosom mit Sicherheit zufällt. Man schließt daraus, daß das Chromatin für das Leben der Zelle und des ganzen Organismus besonders wichtig ist, nämlich daß die Chromosomen die hauptsächlichsten Träger der vererbbaren Anlagen sind, und daß in jedem Chromosom eine Anzahl verschiedener solcher Anlagen perlschnurartig aneinander gereiht sind.
Die Zahl der Chromosomen in den Kernen einer Pflanzenart ist übrigens eine bestimmte. Abweichende Zahlen kommen aber vor[24]; kleinere rühren zum Teil daher, daß einzelne Chromosomen mit ihren Enden vereinigt bleiben; größere Zahlen kommen zum Teil dadurch zustande, daß sich einzelne Chromosomen quer teilen. Bei den verschiedenen Pflanzenarten ist dagegen die Chromosomenzahl verschieden groß; die kleinste Zahl, die man bisher in den Zellen der höher organisierten Gewächse angetroffen hat, ist sechs; meist aber ist sie viel größer (bis über 130). Sehr häufig sind die Chromosomen eines Kerns untereinander verschieden in Größe und Form (Fig. 14). Solche Unterschiede werden bei allen Kernteilungen festgehalten. Diese Tatsache deutet mit großer Sicherheit darauf hin, daß die Chromosomen ihre Individualität auch im Ruhekern bewahren. Man nimmt jetzt an, daß die untereinander verschieden gestalteten Chromosomen Träger verschiedener Gruppen erblicher Anlagen der betreffenden Pflanzenart sind.
In den untersten Abteilungen des Pflanzenreichs, bei manchen Algen und Pilzen, verläuft die indirekte Kernteilung nicht selten einfacher, indem die Chromatinmasse weniger sorgfältig auf beide Tochterkerne verteilt zu werden scheint und die Spindel ganz oder wenigstens teilweise dem Kern entstammt[14].
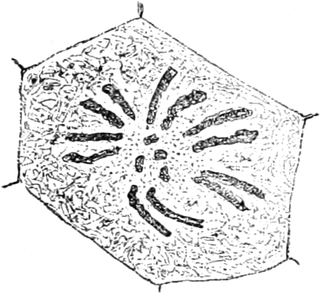
Fig. 14. Embryonale Zelle, dem Querschnitt einer Wurzelspitze der Liliacee Galtonia candicans entnommen, mit einer Kernplatte in Polansicht. Die Chromosomen zu Paaren angeordnet. Vergr. 1600. Nach STRASBURGER.
Die Vorgänge, die sich in einem Mutterkerne während der Vorbereitung zur Teilung abspielen, werden als Prophase der Teilung bezeichnet. Sie reichen bis zur Bildung der Kernplatte, vor deren Fertigstellung sich auch die Längsspaltung der Chromosomen vollzieht. Das Stadium der Kernplatte heißt die Metaphase. Das Auseinanderweichen der Tochterchromosomen erfolgt in der Anaphase, die Bildung der Tochterkerne in der Telophase der Teilung. Der Höhepunkt der ganzen Kernteilung, der Vorgang, der zur Bildung quantitativ und qualitativ gleicher Teilungsprodukte führt, liegt offenbar in der Längsspaltung der Chromosomen. Die fortschreitenden Vorgänge der Kernteilung gehen mit dem Auseinanderweichen der Tochterchromosomen in die rückläufigen über. Daher dauert wohl das Stadium der Kernplatte meist längere Zeit an.
Wodurch die Chromosomen während der Karyokinese in der beschriebenen Weise so regelmäßig bewegt werden, wissen wir noch nicht. STRASBURGER nimmt an, daß die Spindelfasern, die an den Chromosomen zu endigen scheinen, durch Verkürzung die Tochterchromosomen aus der Kernplatte nach den Polen ziehen (Zugfasern), während die von Pol zu Pol laufenden Fasern (Stützfasern) gewissermaßen als Stützen der Kernteilungsfigur dienen. Diese Annahmen erklären aber nicht die Bewegungen der Chromosomen nach der Kernplatte hin.
In bestimmten Zellen der Pflanzen und Tiere, die der Fortpflanzung dienen, vollzieht sich als notwendige Folge einer Befruchtung die Kernteilung in besonderer, von der typischen Teilung abweichender Art, die man als Reduktions- oder meiotische Teilung bezeichnet (vgl. S. 172).
Direkte Kernteilung[25]. Außer der mitotischen oder indirekten gibt es wenn auch selten, eine direkte oder amitotische Kernteilung, auch Fragmentation genannt. Sie stellt sich meist als Alterserscheinung an Kernen ein, die aus indirekter Teilung hervorgegangen sind, und ist im wesentlichen eine Durchschnürung des Kernes, wobei die Teilstücke durchaus nicht in ihrer Größe übereinzustimmen brauchen. Lehrreiche Beispiele für direkte Kernteilung sind die Kerne in den langen Gliederzellen der Characeen.
Bei den Characeen folgen die direkten Teilungen der Kerne in den wachsenden Gliederzellen so rasch aufeinander, daß oft perlschnurförmige Reihen zusammenhängender Teilstücke entstehen. Auf die direkte Kernteilung folgt keine Zellteilung. Die direkte Kernteilung kommt übrigens auch bei Samenpflanzen, z. B. bei Tradescantia, der Liliacee Funkia, Impatiens balsamina (der Balsamine) vor.
b) Vermehrung der Chromatophoren. Auch sie erfolgt durch Teilung, und zwar auf direktem Wege durch Einschnürung. Man kann sie am besten an den Chlorophyllkörnern verfolgen. Jedes Chlorophyllkorn liefert dabei zwei gleich große Körner (Fig. 15).
c) Teilung des Plasmas. In den einkernigen Zellen der höher organisierten Gewächse pflegen Kern- und Zellteilungen ineinander zu greifen. Während die Tochterchromosomen sich trennen, bleiben die von Pol zu Pol reichenden Fasern der Kernspindel als Verbindungsfäden zurück (Fig. 13, 9 v), ja sie werden durch Einschaltung neuer sogar noch vermehrt (Fig. 13, 10, 11) und bilden schließlich zusammen einen tonnenförmigen Körper, den Verbindungsfadenkomplex (Fig. 13, 11). Jeder Verbindungsfaden schwillt alsdann in der Äquatorialebene zu einem Körnchen an (Fig. 13, 11); dadurch entsteht die Zellplatte, die also in Seitenansicht wie eine Körnchenreihe aussieht. Ist die Zelle sehr plasmareich oder schmal, so erreicht der Komplex der Verbindungsfäden an der Peripherie allseitig ihre Seitenwände. Aus den verschmelzenden Körnchen der Zellplatte geht alsdann eine plasmatische Schicht hervor, die sich spaltet und in der Spaltungsfläche eine Scheidewand aus Zellhautstoff ausscheidet. Letztere teilt annähernd gleichzeitig, simultan, den Mutterprotoplasten in zwei Tochterzellen (Fig. 13, 12 m).
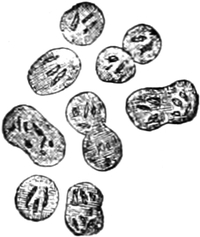
Fig. 15. Chlorophyllkörner aus dem Blatte des Laubmooses Funaria hygrometrica; ruhend und in Teilung. Im Innern der Körner kleine Stärkekörnchen. Vergr. 540. Nach STRASBURGER.
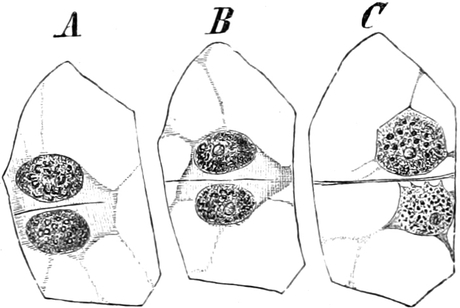
Fig. 16. Drei Teilungszustände in derselben Zelle der Orchidee Epipactis palustris. Nach dem Leben entworfen. Vergr. 365. Nach TREUB.
Ist dagegen in der Zelle ein größerer Saftraum vorhanden oder ist die Zelle sehr groß, so vermag der Komplex der Verbindungsfäden sie nicht mit einem Male zu durchsetzen; vielmehr bildet er die Scheidewand dann allmählich, succedan, aus (Fig. 16): zunächst etwa einen Teil, der an eine Seitenwand der Mutterzelle anschließt (Fig. 16 A), sodann einen folgenden, wobei er an seinem freien Rande die Zellplatte ergänzt, aber sich von den schon gebildeten Teilen der Scheidewand zurückzieht (B), und so fort und fort, bis der ganze Protoplast durchschnitten und seine Teilung vollendet ist (C). In langen Zellen, die sich längs teilen, z. B. denen des Kambiums, schreitet die Zellwandbildung dagegen von der Zellmitte aus, wo der Kern liegt, succedan allseits nach der Peripherie fort[26].
Es gibt übrigens Fälle, wo die Verbindungsfäden klein an Zahl sind; alsdann werden die Knötchen durch Plasmaplatten zur Zellplatte verbunden.
Bei den Thallophyten werden die Scheidewände der vielkernigen und der einkernigen Zellen dagegen fast niemals in Verbindungsfadenkomplexen gebildet. Sie entstehen vielmehr entweder simultan und zwar in Plasmaplatten, die auf einmal in der ganzen Teilungsebene ausgebildet werden, oder succedan, indem eine ringförmige Leiste aus Membransubstanz allmählich von der Mutterzellwand aus, einer Irisblende ähnlich, in das Zellinnere immer tiefer vordringt (Fig. 17, 18) und es schließlich durchschnürt. In einkernigen Zellen geht auch bei diesem Teilungsvorgang die Teilung des Kerns der Zellteilung voraus; die neue Scheidewand entsteht hierauf in gleichen Entfernungen von den beiden Tochterkernen, und zwar in der Zone, wo ursprünglich der Kern gelegen hatte.
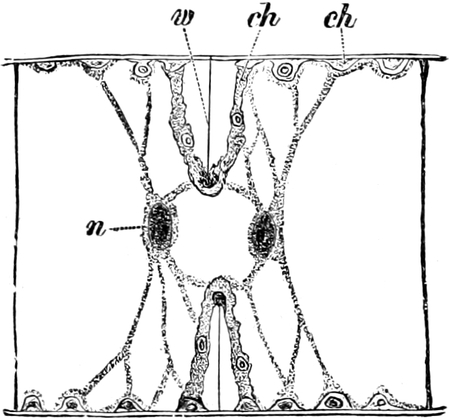
Fig. 17. Eine Spirogyrazelle in Teilung. n Einer der beiden Tochterkerne, w die wachsende Scheidewand, ch ein durch letztere nach innen gedrängtes Chlorophyllband. Vergr. 230. Nach STRASBURGER.
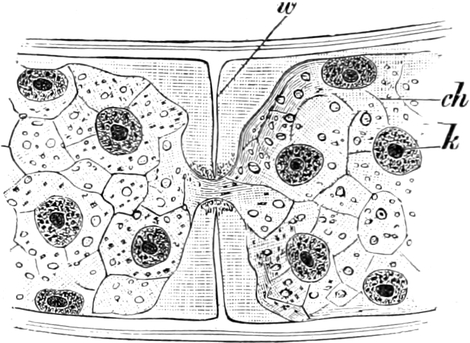
Fig. 18. Stück einer sich teilenden Zelle von Cladophora fracta. w Die wachsende Scheidewand. ch Chromatophoren, k Kerne. Vergr. 600. Nach STRASBURGER.
Bei den nackten Zellen der Myxomyzeten und Flagellaten ist die Teilung eine aktive Durchschnürung des Plasmas.
In vielkernigen Zellen folgt nicht auf jede Kernteilung eine Zellteilung; ja unter den Algen und Pilzen gibt es sogar große, äußerlich nicht selten reich gegliederte Formen, deren Inneres nur von einem einzigen, sehr vielkernigen Plasmaleib gebildet, also überhaupt nicht durch Zellwände gekammert wird.
2. Abarten der typischen Zellteilung. Hier und da im Pflanzenreiche kommen Abweichungen von der typischen Zellteilung vor, so die Vielzellbildung, die Zellsprossung und die freie Zellbildung.
a) Freie Kernteilung und Vielzellbildung. Die Kernteilungen in den vielkernigen Zellen der Thallophyten können bereits als Beispiele für freie, d. h. von Zellteilungen nicht begleitete, Kernteilungen angeführt werden. Aber auch in Pflanzen mit typisch einkernigen Zellen kommen solche freie Kernteilungen vor; besonders lehrreich in bestimmten, sehr großen Zellen der Phanerogamen, den Embryosäcken, in denen der Embryo ausgebildet wird. In den meisten Embryosäcken sieht man den sekundären Embryosackkern sich in zwei Kerne teilen, die samt ihren Nachkommen den Vorgang wiederholen. So entstehen schließlich nicht selten Tausende von Kernen, die sich mit gleichen Abständen in dem plasmatischen Wandbelag des Embryosackes verteilen. Zellteilungen begleiten diese Teilungen nicht. Hört die Größenzunahme des Embryosackes auf, so zerfällt sein protoplasmatischer Wandbelag simultan oder fortschreitend in meist so viele Zellen, wie er Kerne enthält. Dieser Vorgang, der als Vielzellbildung bezeichnet wird, vollzieht sich folgendermaßen: Die Kerne umgeben sich in ihrem ganzen Umkreis mit Verbindungsfäden, so daß sie strahlenden Sonnen gleichen (Fig. 19); in diesen Fadenkomplexen treten gleich weit von den Kernen Zellplatten und in diesen Zellwände auf. Die Vielzellbildung läßt sich von der Zweiteilung ableiten und als ein verkürzter Vorgang auffassen, der durch besondere Verhältnisse (manchmal etwa durch ungewöhnlich rasche Größenzunahme einer Zelle) bedingt sein kann. Durch Vielzellbildung entstehen auch die Fortpflanzungszellen bei vielen Algen und Pilzen.
b) Zellsprossung. Eine Abart der typischen Teilung der Protoplasten, aber mit ihr durch Zwischenstufen verbunden, ist auch die Sprossung. Die Mutterzelle wird dabei nicht halbiert; sie treibt vielmehr einen Auswuchs, der an seiner Ursprungsstelle später durch eine Zellwand abgetrennt wird. So vermehren sich die Zellen der Hefe (Fig. 20), und so entstehen auch die als Konidien und als Basidiosporen bezeichneten Fortpflanzungszellen zahlreicher Pilze (Fig. 398).
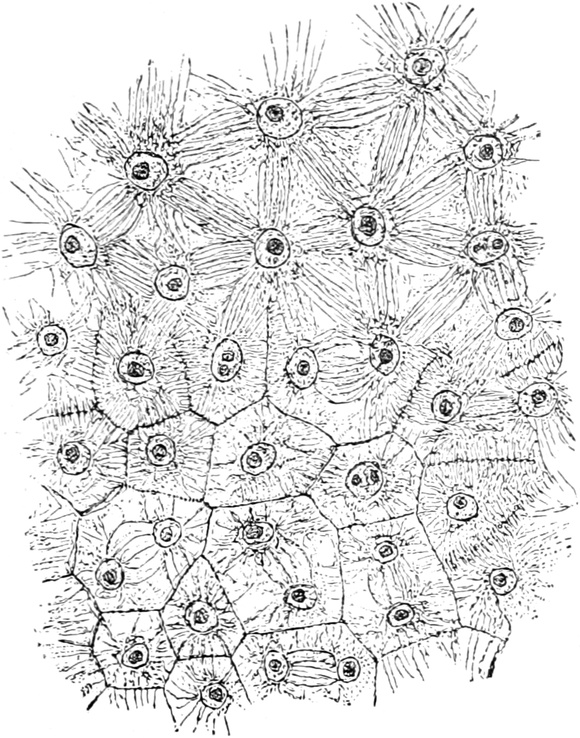
Fig. 19. Stück des protoplasmatischen Wandbelags aus dem Embryosack von Reseda odorata, bei beginnender Vielzellbildung. Der Vorgang schreitet von unten nach oben fort. Nach einem fixierten und gefärbten Präparate. Vergr. 240. Nach STRASBURGER.
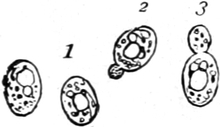
Fig. 20. Saccharomyces cerevisiae, 1 nicht sprossende, 2 und 3 sprossende Zellen. Vergr. 540. Nach STRASBURGER.
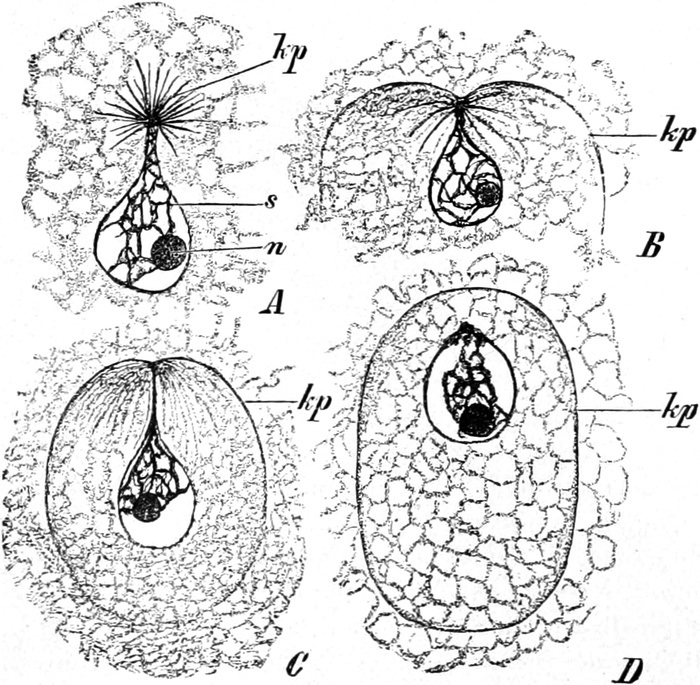
Fig. 21. Aufeinanderfolgende Stadien der Abgrenzung einer Spore im Askus von Erysiphe communis. s Kerngerüst, n Nucleolus. Vergr. 1500. Nach HARPER.
c) Freie Zellbildung. Dieser Vorgang entfernt sich von der gewöhnlichen Zweiteilung der Zellen schon weiter; denn dabei folgt auf die freie Kernteilung eine Bildung von Zellen, die einander nicht berühren und nicht das gesamte Plasma ihrer Mutterzelle in sich aufnehmen. Freie Zellbildung ist z. B. bei der Sporenbildung der Ascomyceten, auch in der Keimanlage einiger nacktsamiger Samenpflanzen (Gymnospermen), wie von Ephedra, und bei der Bildung des Eiapparates und der Antipoden bei den Angiospermen zu beobachten. Bei den Ascomyceten verläuft sie in folgender Weise. Durch freie Teilung des in dem jungen Askusschlauch vorhandenen Kernes und seiner Nachkommen werden in dem Plasma acht Kerne gebildet. Um jeden Kern wird hierauf eine bestimmte Plasmamenge der Zelle gegen die periphere Plasmamasse (Periplasma) durch eine Plasmahautschicht abgegrenzt, die sich mit einer Zellhaut umgibt, so daß acht voneinander getrennte Sporen entstehen (vgl. Fig. 382). Wie die Untersuchungen von HARPER[27] gezeigt haben, geht die Bildung der Hautschichten hierbei von einer zentriolenartigen Plasmaansammlung aus (Fig. 21 A), die dem Spindelpol der vorausgegangenen Teilungsfigur entspricht. Nach dieser Plasmamasse hin ist der Kern schnabelartig lang vorgestreckt. Von ihr aus werden springbrunnenartige Plasmastrahlen entsandt (kp), von denen ein Teil schließlich zu der Hautschicht verschmilzt (B, C, D).
III. Gröbere leblose Einschlüsse der Protoplasten[28].
Abgesehen von den winzigen Mikrosomen, die im Plasma stets vorhanden sind, treten bei der Umwandlung der embryonalen Zellen zu Dauerzellen in allen Protoplasten, vor allem im Plasma und in den Chromatophoren, gröbere leblose Einschlüsse auf. Erwähnt wurde ja schon der Zellsaft, der in kleineren oder größeren Tröpfchen kaum einer pflanzlichen Dauerzelle fehlt. Neben diesen Tröpfchen, die aus wäßrigen Lösungen bestehen, kommen nicht selten auch Fett- oder Öltröpfchen und feste Körper in amorpher Form oder als Kristalle vor. Viele dieser Einschlüsse sind als Reservestoffe für das Leben der Pflanze von großer Bedeutung; namentlich in den Zellen der Speicherorgane (Knollen, Zwiebeln, Samen) häuft die Pflanze solche in großer Menge auf, um sie im Falle des Bedarfs wieder zu verbrauchen. Andere sind Endprodukte des Stoffwechsels, die aber ökologisch noch von großer Wichtigkeit sein können. Von manchen Einschlüssen kennen wir die chemische Zusammensetzung noch nicht.
A. Einschlüsse des Plasmas. 1. Flüssige Einschlüsse des Plasmas. a) Der wäßrige Zellsaft. Wie wir schon wissen, wird als Zellsaft die wäßrige Flüssigkeit in den größeren Vakuolen oder im Saftraume ausgewachsener Pflanzenzellen bezeichnet (Fig. 3 v). Sie ist reicher oder ärmer an sehr verschiedenen gelösten Substanzen, teils Reservestoffen, teils Zwischen- oder Endprodukten des Stoffwechsels; auch feste Einschlüsse, besonders in Form von Kristallen, kommen darin vor. Der Zellsaft kann die gleichen, aber auch andere Stoffe gelöst enthalten wie das Protoplasma und selbst in den Vakuolen einer Zelle verschieden zusammengesetzt sein.
Jeder Zellsaft enthält zunächst anorganische Salze in Lösung, besonders Nitrate, Sulfate und Phosphate. Er reagiert gewöhnlich sauer, und zwar durch die organischen Säuren (Äpfelsäure, C4H6O5, z. B. überall in den Blättern der Fettpflanzen; Weinsäure, C4H6O6; Oxalsäure, C2O4H2 u. a.) oder organischsauren Salze, die in ihm vorkommen.
Zu besonders häufigen Bestandteilen des Zellsaftes zählen ferner die löslichen Kohlehydrate, die vielfach als Reservestoffe angehäuft werden. Unter ihnen herrschen vor die Zuckerarten, vor allem die Disaccharide (C12H22O11) Rohrzucker (Saccharose), Malzzucker (Maltose) und von Monosacchariden (C6H12O6) der Traubenzucker (Glykose). Oft wird Rohrzucker als Reservestoff gespeichert, z. B. in der Mohrrübe, vor allem aber in der Zuckerrübe und dem Stengel des Zuckerrohrs, woraus man ihn infolgedessen gewinnt. Eine ähnliche Rolle spielen andere im Zellsaft gelöste Kohlehydrate, so bei den Kompositen das Inulin, bei Pilzen das Glykogen. Als Zucker wandern auch die Kohlehydrate innerhalb des Pflanzenkörpers.
Glykose oder Maltose haltige Schnitte, die in Kupfersulfatlösung gelegt, dann abgespült und in Kalilauge und Seignettesalzlösung erwärmt worden sind, reduzieren das Kupferoxyd, so daß ein ziegelroter Niederschlag von Kupferoxydul entsteht. Bei Vorhandensein von Rohrzucker wird der Zellsaft nur blau gefärbt. Das Inulin, ein Polysaccharid (C6H10O5)n, kann man mit Alkohol in Form kleiner Kügelchen niederschlagen und in Wasser durch Erwärmen wieder auflösen. Wenn inulinreiche Pflanzenteile, z. B. die Wurzelknollen der Georgine (Dahlia variabilis), in Alkohol oder Glyzerin gelegt werden, so fällt das Inulin in kugeligen Gebilden, vielleicht Sphäriten (Sphärokristallen), aus, die von radialen Spalten durchsetzt sind, leicht in keilförmige Stücke zerfallen und manchmal auch deutlich konzentrisch geschichtet sind.
Das bei Tieren als Reservestoff sehr verbreitete Kohlehydrat Glykogen, ein Polysaccharid von der Zusammensetzung (C6H10O5)n, kommt als Einschluß des Plasmas im Pflanzenreich nur bei den Pilzen, Myxomyceten und Cyanophyceen in Form von Tröpfchen vor. Bei den Pilzen tritt es an die Stelle anderer Kohlehydrate, z. B. der Stärke und des Zuckers. Jodlösungen färben das Glykogen rotbraun. Die Färbung schwindet größtenteils beim Erwärmen, um bei der Abkühlung wieder aufzutreten.
Schleim, der aus Kohlehydraten besteht, als Reservestoff enthält der Zellsaft häufig in den Zellen von Zwiebeln, z. B. von Allium Cepa und Urginea (Scilla) maritima, ferner in denen der Orchisknollen, doch auch in Zellen oberirdischer Pflanzenteile (Fig. 22), besonders der Fettpflanzen-(Sukkulenten-)Blätter. Schleim kommt aber auch außerhalb der Protoplasten in Zellmembranen vor (vgl. S. 32).
Weiter enthält der Zellsaft als Reservestoffe oder als Zwischenprodukte des Stoffwechsels ganz allgemein auch Amide, vor allem das Asparagin, vielfach auch Eiweißstoffe (für deren Reaktionen vgl. S. 12).
Mit konzentrierten Lösungen von Gerbstoffen[29] gefüllte, stark lichtbrechende und unter Umständen sehr große Vakuolen sind im Plasma vieler Zellen, besonders Rindenzellen, vorhanden; auch Alkaloide, Glykoside (vgl. S. 12) und den Glykosiden verwandte Bitterstoffe sind nicht selten im Zellsafte gelöst. Das alles sind meist Endprodukte des Stoffwechsels.
Als Gerbstoffe werden Gemische sehr verschiedenartig zusammengesetzter aromatischer Verbindungen bezeichnet, die oft Glykoside sind. Besonders verbreitet bei den Pflanzen kommen in glykosidischer Bindung die Gallussäure, die Gallusgerbsäure (Digallussäure oder Tannin) und die Ellagsäure vor. Die dunkelblaue oder grüne Färbung mit Ferrichlorid- oder Ferrisulfatlösung, der rotbraune Niederschlag mit wäßriger Kaliumbichromatlösung gelten im allgemeinen als Gerbstoffreaktionen. Freilich reagieren auch einige andere Stoffe so. Die Gerbstoffe werden in den Pflanzen meist nicht weiter verarbeitet. Infolge ihrer fäulniswidrigen Eigenschaften dienen sie öfters zur Imprägnierung von Zellhäuten, die länger ausdauern sollen.
Vielfach ist der Zellsaft gefärbt, besonders durch Anthozyane, eine Gruppe stickstoffreier Glykoside. Sie sind rot in sauren, blau in schwach alkalischen Zellsäften; unter Umständen sind sie auch dunkelrot, violett (so in neutralem Zellsaft), dunkelblau, selbst schwarzblau gefärbt. Alkalien wandeln die Farbe oft in grün um. Bei einer sehr großen Anzahl intensiv gefärbter Pflanzen sind die Anthozyane auch kristallinisch oder amorph ausgeschieden. Seltener findet man, im Zellsaft gelöst, auch gelbe Farbstoffe, die Anthochlore[30], z. B. in den Zellen der gelben Blütenblätter der Primeln, des gelben Fingerhutes, der Löwenmäulchen, der Königskerze; oder auch ein braunes Pigment, das Anthophaein, z. B. in den Zellen der schwarzbraunen Flecken in den Saubohnenblüten.
Einsicht in die chemische Konstitution der Anthozyane verdankt man vor allem den Untersuchungen von WILLSTÄTTER und seinen Schülern[31]. Danach sind es meist Glykoside, in denen an Zucker aromatische Farbstoffkomponenten, die Zyanidine, gebunden sind, z. B. bei der Kornblumenblüte das Zyanidin (C15H10O6), bei der Blüte des Rittersporns das Delphinidin (C15H10O7). Die Zyanidine, die auch frei in Zellsäften vorkommen können, sind Hydroxylverbindungen eines Phenylbenzopyryliums; sie sind den Flavonen verwandt, die in Pflanzen sehr weit verbreitet sind. In roten Blüten sind die Zyanidine an Säuren gebunden, in blauen an Alkalien; in violetten sind es neutrale Farbstoffe. Auch die Anthochlore sind Glykoside mit aromatischen Farbstoffkomponenten, die zu den Flavonen gehören, oder solche freien Flavone[30].
„Blutfarbige“, d. h. braune Laubblätter, z. B. die der Blutbuchen, Bluthaselnüsse u. a., verdanken ihre eigenartige Färbung dem Zusammenwirken von rotem Anthozyan und grünen Chlorophyllkörnern. Auch die Rötung der Laubblätter im Herbste beruht auf Anthozyanbildung.
Bei den Blüten und Früchten kommen die verschiedenen Farben, die im allgemeinen der Anlockung von Tieren dienen und deshalb als Lockfarben bezeichnet werden, durch die Farben der Zellsäfte, die Verteilung der farbstoffhaltigen Zellen, durch Chromoplasten, endlich auch oft durch die Kombination der gelösten Farbstoffe mit gelben, gelbroten oder roten Chromoplasten und grünen Chloroplasten zustande.
b) Fettvakuolen. Als Reservestoffe sind die Fette (fetten Öle) im Pflanzenreiche so verbreitet, daß ungefähr neun Zehntel aller Phanerogamen sie im Plasma ihrer Samen und zwar als feinste, optisch nicht nachweisbare Emulsion speichern. In besonders fettreichen Samen macht das Öl bis zu 70% der Trockensubstanz aus. Fette können aber auch als stark lichtbrechende Tröpfchen (Fettvakuolen) im Plasma auftreten, so z. B. in den keimenden Samen. Die Fette sind Gemische vieler Glyzerinester von Fettsäuren, besonders der Palmitinsäure (C16H32O2), der Stearinsäure (C18H36O2), der Ölsäure (C18H34O2) u. a. Mit diesen Reservestoffen wird der Raum der Speicherorgane am besten ausgenutzt, da das Fett einen besonders großen Energievorrat gegenüber anderen Speicherstoffen hat.
c) Vakuolen mit ätherischen Ölen und Harzen[32]. Auch sie bilden stark lichtbrechende Tröpfchen; z. B. im Zellinhalt zahlreicher Blumenblätter, in Rhizomen verschiedener Pflanzen (Acorus calamus, Zingiber officinale), in Rinden (Cinnamomum), in Blättern (Laurus nobilis), endlich in Fruchtschalen und Samen (Piper nigrum, Illicium anisatum). Die Wände solcher Zellen sind nicht selten verkorkt. Die ätherischen Öle sind vor allem Gemische von Terpenen (C10H16)1 bis n und Terpenderivaten nebst gewissen Estern, Phenolen, Phenolderivaten und höheren Alkoholen; die Harze sind Gemische von Terpenen und Harzsäuren, die durch Oxydation aus den Terpenen entstehen. Ätherische Öle und Harze haben fäulniswidrige Eigenschaften. Die ätherischen Öle der Blüten locken durch ihren Duft die bestäubenden Insekten an. Unter Umständen nimmt das Öl auch Kristallform an, z. B. in den Blumenblättern der Rose.
2. Feste Einschlüsse des Plasmas. a) Kristalle von Kalziumoxalat, Ca(CO2)2 mit zwei oder sechs Mol. Kristallwasser, kommen in sehr vielen Pflanzen vor. Sie werden, als Endprodukte des Stoffwechsels, wohl meist im Zytoplasma (oder seltener im Zellsafte kleinerer oder größerer Vakuolen) angelegt, liegen später aber sehr oft im Zellsaftraum und nehmen unter Umständen schließlich fast die ganze Zelle ein. In letzterem Falle sind die übrigen Bestandteile der Zelle sehr reduziert, die Zellwände nicht selten verkorkt. Es bilden sich entweder große Einzelkristalle (Fig. 132 k, 173 Bk, 182 k), deren Formen leicht zu erkennen sind, oder viele winzige Kriställchen, die so zahlreich sein können, daß sie als Kristallsand die Zelle anfüllen, oder viele, Rhaphiden genannte Kristallnadeln, die parallel nebeneinander liegen und in der Zelle Rhaphidenbündel bilden (Fig. 22), oder schließlich morgensternförmige Kristalldrusen (Fig. 132 k′, 184 k). Bei jeder Pflanzenart herrschen bestimmte Kristallformen vor.
Die großen Einzelkristalle gehören dem tetragonalen oder dem monosymmetrischen Kristallsystem an. Im ersteren Fall enthalten sie 6 Mol., im letzteren 2 Mol. Kristallwasser. Der Konzentrationsgrad der Lauge, aus der die Kristalle entstehen, soll es oft bedingen, ob sie sich nach dem einen oder nach dem anderen System bilden. Besonders häufig begegnet man den morgensternförmigen Kristalldrusen, aus vielen Kristallen zusammengesetzt, die von einem organischen Kern ausstrahlen. Bei monokotylen Gewächsen, doch auch bei zahlreichen Dikotylen, sind die nadelförmigen, monoklinen Rhaphiden verbreitet (Fig. 22). Ein solches Bündel ist stets in eine große, mit Schleim gefüllte Vakuole eingeschlossen. Die Oxalatkristalle sind ohne Aufbrausen löslich in Salzsäure, aber unlöslich in Essigsäure.
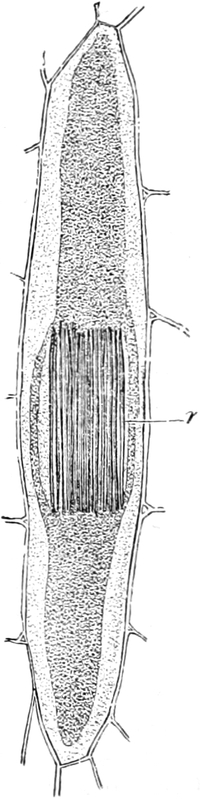
Fig. 22. Eine mit Schleim und einem Rhaphidenbündel gefüllte Zelle aus der Rinde von Dracaena rubra. r das Rhaphidenbündel. Vergr. 160. Nach SCHENCK.
Auch Kieselkörper, die sich nur in Fluorwasserstoffsäure lösen lassen, werden in manchen Zellen, besonders bei Gräsern, Palmen und Orchideen, gebildet. Sie füllen oft fast die ganze Zelle aus.
b) Kleber und Eiweißkristalle. In saftigen Reservestoffbehältern werden vor allem gelöste Eiweißkörper als Reservestoffe im Zellsaft gespeichert. Man kann solche z. B. in den Zellen der Kartoffelknolle mit Alkohol als feinkörnigen Niederschlag fällen. In trockenen Reservestoffbehältern aber, so namentlich in zahlreichen fetthaltigen Samen, werden die Eiweißkörper zu festen Körnern, den Kleber-, Proteïn- oder Aleuronkörnern (Fig. 23), die in fettreichen Samen besonders groß sind. Sie gehen aus Vakuolen hervor, deren Eiweißgehalt allmählich steigt, schließlich bei Wasserverlust in Form eines rundlichen Korns oder in einzelnen Fällen eines unregelmäßigen, sogar gelappten Gebildes erstarrt, und bestehen vornehmlich aus Globulinen[33]. Diese Eiweißstoffe kristallisieren in vielen Fällen teilweise aus und bilden einen, selten mehrere, im Aleuronkorn eingeschlossene Kristalle (Fig. 23 k). Besonders groß werden diese Kristalle in den Aleuronkörnern der Para„nüsse“ (der Samen von Bertholletia excelsa). In Aleuronkörnern mit Eiweißkristallen kommen meist noch rundliche Körner, die Globoide (Fig. 23 g), vor, die wohl ebenfalls aus Eiweißkörpern bestehen, doch verbunden mit dem Kalzium- und Magnesiumsalz (dem Phytin) der organischen Inosithexaphosphorsäure C6H6[O2P(OH)2]6. Globoide liegen übrigens bei manchen Samen auch frei im Plasma. Ferner können Kristalle von Kalziumoxalat in Aleuronkörnern eingeschlossen sein. In den Körnern unserer Getreidearten enthält die äußerste Zellschicht relativ kleine, einschlußfreie Aleuronkörner (Fig. 24 al), das innere Gewebe dagegen fast nur Stärke. Die Aleuronschicht bleibt, bei der Verarbeitung der Körner zu Mehl, an den Körnerschalen haftend in der Kleie zurück, geht also für das Mehl verloren.
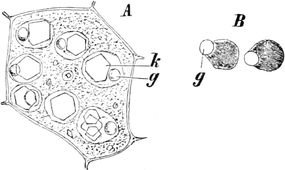
Fig. 23. A Zelle aus dem Endosperm des Rizinussamens unter Wasser beobachtet. B Einzelne Aleuronkörner unter Olivenöl, k Eiweißkristall, g Globoid. Vergr. 540. Nach STRASBURGER.
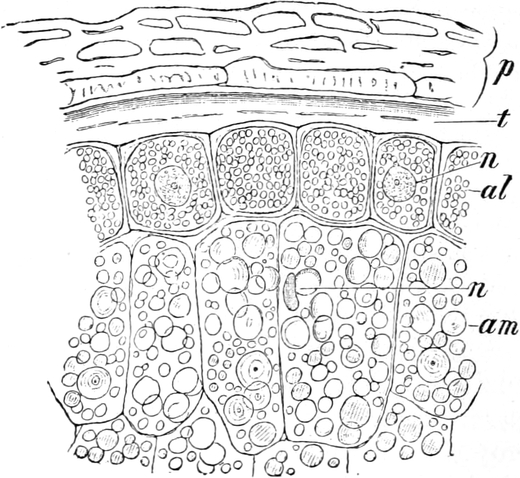
Fig. 24. Äußerer Teil eines Querschnittes durch ein Weizenkorn (Triticum vulgare). p Fruchthülle, t Samenhaut. An die Samenhaut grenzt das Endosperm. In diesem al Aleuronkörner, n Zellkern, am Stärkekörner. Vergr. 240. Nach STRASBURGER.
Die Reaktionen des Klebermehls sind im wesentlichen die nämlichen, die wir früher schon für Eiweißkörper kennen gelernt haben. Mit Jodlösung färbt sich zum Beispiel die Aleuronschicht des Weizenkorns gelbbraun.
Die Eiweißkristalle, die quellbar sind und sich ebenfalls mit Jod gelbbraun färben, gehören dem regulären oder dem hexagonalen Kristallsystem an. Solche Eiweißkristalle können aber auch unmittelbar im Plasma vorkommen, so in peripherischen, stärkearmen Zellen der Kartoffelknollen, ferner in Chromatophoren (Fig. 28) und in Zellkernen, so nicht selten bei der Schuppenwurz (Lathraea) und vielen anderen Scrophulariaceen, sowie den Oleaceen.
B. Einschlüsse der Chromatophoren. Eiweiß- und Farbstoffkristalle haben wir schon als Einschlüsse der Chromatophoren kennen gelernt (Fig. 28 kr). Sehr viel wichtiger aber ist die Stärke[34]. Fast alle höher organisierten Pflanzen bilden nämlich am Licht in ihren Chloroplasten Stärke, und zwar in Körnerform aus. Die Körner treten hier in Mehrzahl auf (Fig. 15), werden aber nur ausnahmsweise groß, weil sie bald nach ihrer Entstehung wieder aufgelöst werden, und sind meist aus noch kleineren Körnchen zusammengesetzt. Große Stärkekörner findet man nur in den Reservestoffbehältern, also dort, wo Stärke aus zugeführter, assimilierter Substanz gebildet wird. Man bezeichnet solche Stärke als Reservestärke im Gegensatz zu der Assimilationsstärke der Chloroplasten. Auch sie entsteht, und zwar aus Zucker, nur in Chromatophoren, den uns schon bekannten Leukoplasten (S. 16), die man daher auch als Stärkebildner bezeichnet.
Alle Stärke des Handels ist Reservestärke. Ihre Menge in einem Reservestoffbehälter ist oft sehr groß: sie macht etwa bis 20% des Gesamtgewichts bei der Kartoffelknolle und sogar bis 70% beim Weizen aus. Reines Stärkemehl, das nur aus Stärkekörnern besteht, gewinnt man durch Auswaschen aus zerkleinerten Reservestoffbehältern. Im gewöhnlichen Mehl aber sind auch die zermahlenen Zellhäute und Protoplasten dieser Behälter enthalten.
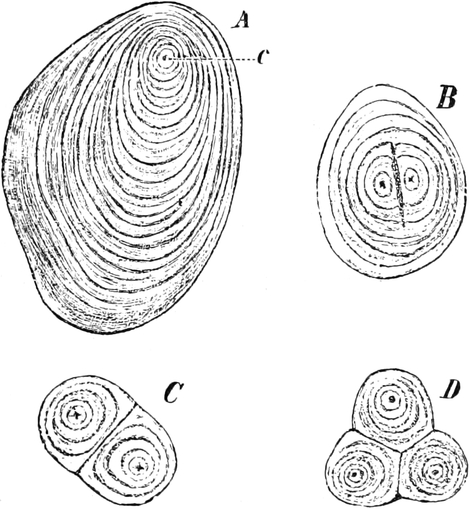
Fig. 25. Stärkekörner aus der Kartoffelknolle. A Ein einfaches, B ein halb zusammengesetztes Stärkekorn, C und D ganz zusammengesetzte Stärkekörner. c Der Bildungskern des Stärkekornes. Vergr. 540. Nach STRASBURGER.
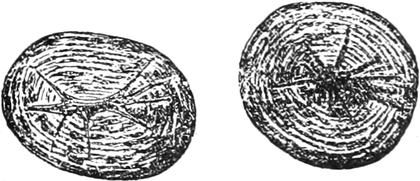
Fig. 26. Stärkekörner aus den Kotyledonen von Phaseolus vulgaris. Vergr. 540. Nach STRASBURGER.
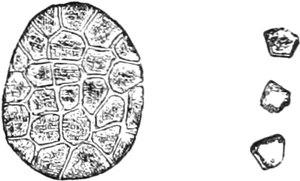
Fig. 27. Stärkekörner des Hafers (Avena sativa). Ein zusammengesetztes Korn und Teilkörner aus einem solchen. Vergr. 540. Nach STRASBURGER.
Die Reservestärke besteht aus flachen oder rundlichen (eiförmigen oder kugelrunden) Körnern, die in den Speicherorganen verschiedener Pflanzen sehr ungleich groß sind, wie schon ein Vergleich der gleich stark vergrößerten Figuren 25–27 zeigt; ihre Größe schwankt zwischen 0,002 und 0,17 mm. Die größten sind bereits mit dem bloßen Auge als helle Körperchen zu erkennen. Verhältnismäßig große Stärkekörner, im Mittel mit einem Durchmesser von 0,09 mm, enthalten die Kartoffelknollen. Sie sind (Fig. 25) hier deutlich geschichtet. Die Schichtung wird durch die verschiedene Dichte der Kornsubstanz verursacht und ist exzentrisch: es wechseln dickere, dichtere Lagen, die im durchfallenden Lichte heller sind, mit dünneren, weniger dichten und dunkleren ab, und zwar ist der organische Initialpunkt oder Bildungskern, um den die Schichten sich gelagert haben, dem einen Rande des Kornes bedeutend genähert. Dagegen sind die Stärkekörner der Hülsenfrüchte und der Getreidearten zentrisch geschichtet: ihr Bildungskern liegt in der Mitte. Die deutlich geschichteten Stärkekörner der Bohne (Phaseolus vulgaris, Fig. 26) werden außerdem meist von radialen Spalten durchsetzt. Beim Weizen sind sie in einer und derselben Zelle von zweierlei, sehr verschiedener Größe als undeutlich geschichtete linsenförmige Großkörner und winzige kugelförmige Kleinkörner ausgebildet. Die bisher betrachteten Reservestärkekörner sind einfach. Es gibt aber auch halb zusammengesetzte und ganz zusammengesetzte. Die ersteren enthalten zwei oder mehr Teilkörner, die von gemeinsamen Schichten umgeben sind: die letzteren bestehen nur aus Teilkörnern ohne gemeinsame Schichten. Halb zusammengesetzte (Fig. 25 B) und ganz zusammengesetzte (Fig. 25 C, D) Stärkekörner kommen in der Kartoffelknolle vereinzelt zwischen den einfachen vor. In anderen Fällen sind ganz zusammengesetzte Stärkekörner fast allein vorhanden, so z. B. im Haferkorn (Fig. 27) oder im Reiskorn. 4–100 Teilkörner setzen die Stärkekörner beim Reis, bis 300 beim Hafer, gelegentlich bis 30000 bei Spinacia glabra zusammen. Die Stärkekörner haben also bei jeder Pflanzenart eine für sie bezeichnende Form.
Der Bau der Stärkekörner erklärt sich aus ihrer Bildungsgeschichte. Bleibt das Stärkekorn während seines Wachstums von der Substanz der Leukoplasten gleichmäßig umhüllt, so wächst es gleich stark nach allen Seiten und erhält zentrischen Bau. Gelangt es während seines Wachstums an die Peripherie des Stärkebildners, so wächst es dort stärker, wo die Substanz des Leukoplasten es in größerer Dicke umgibt, und wird exzentrisch (Fig. 28). Zusammengesetzte Körner bilden sich dann, wenn in einem Leukoplasten gleichzeitig mehrere Stärkekörner nebeneinander entstehen, die bei weiterem Wachstum zusammenstoßen. Werden um die Teilkörner noch gemeinsame Schichten abgelagert, so kommt ein halb zusammengesetztes Korn zustande.
Die Stärkekörner sind aus Kohlehydraten von der Zusammensetzung (C6H10O5)n aufgebaut. Soll die Stärke im Stoffwechsel weiter verwertet werden, so löst die Pflanze sie durch ein Enzym, die Diastase, wieder auf; die Stärke wird dabei in Zucker (Maltose) umgewandelt.
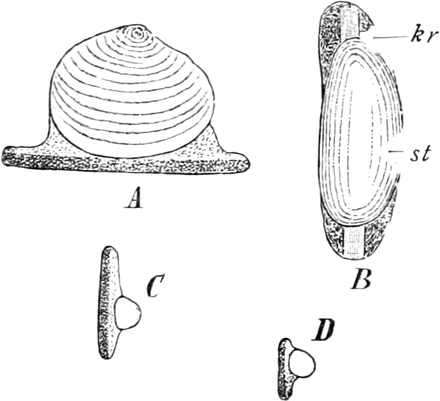
Fig. 28. Leukoplasten aus der oberirdischen Knolle der Orchidee Phajus grandifolius. A, C und D von der Seite, B von oben gesehen. st Stärke, kr Eiweißkristall. Vergr. 540. Nach STRASBURGER.
Die Stärkekörner hält man für kristallinische Gebilde, Sphärokristalle oder Sphärite, die aus miteinander verwachsenen, feinen, radial angeordneten und büschelig verzweigten Kristallnadeln der α- und β-Amylose aufgebaut sein sollen. Die Schichtung ist der Ausdruck von Form- und Mengenverschiedenheiten der Kristallnadeln in den aufeinander folgenden Schichten. Im polarisierten Lichte zeigen die Stärkekörner, ähnlich wie anorganische Sphärite, ein dunkles Kreuz. Auch Röntgenogramme der Stärkekörner sprechen vielleicht für deren kristallinischen Bau.
Die Stärkekörner werden meist durch wasserhaltige Jodlösungen zunächst blau, schließlich fast schwarz gefärbt; weinrot färben sich aber z. B. die des Klebreises. Sie verquellen bei gewöhnlicher Temperatur leicht in Kali- oder Natronlauge und in Chloralhydratlösung, außerdem unter Kleisterbildung in Wasser von 60–80° C. Lösung, d. h. Umwandlung in Zucker ohne vorausgehende Quellung, erfolgt in konzentrierter Schwefelsäure. Ohne Zusatz von Wasser erhitzt, d. h. geröstet, geht Stärke in wasserlösliche Stoffe („Röstgummi“, technisches Dextrin) über.
Mit Jod rötlich färbt sich auch die (Florideen-)„Stärke“ der Rotalgen. Diese rundlichen Körner haben ähnlichen Bau wie die Stärkekörner der höheren Pflanzen, scheinen aber außerhalb der Chromatophoren, jedoch in inniger Berührung mit ihnen zu entstehen und sollen chemisch dem Glykogen näher stehen als echter Stärke[35].
IV. Die Zellmembranen[36].
Wie schon erwähnt, ist jeder Protoplast bei den Pflanzen in der Regel von einem festen Gehäuse, der Zellhaut oder Zellmembran, umgeben. Sie ist ein Außenprodukt des Protoplasten, das wir nicht als lebend betrachten. Viele Gewächse beginnen freilich ihre Entwicklung mit nackten Protoplasten, entweder als unbehäutete Schwärmsporen oder Eizellen. Diese Zellen scheiden aber, ehe sie sich zu entwickeln, zu teilen beginnen, an ihrer Oberfläche eine dünne Zellhaut aus. Bei der Vermehrung der Zellen werden, wie wir gesehen haben, gewöhnlich nach der Teilung des Plasmas Scheidewände zwischen die neu gebildeten Zellen eingeschaltet, so daß auch dann alle Protoplasten von Zellhäuten umhüllt bleiben.
Da nacktes Protoplasma meist Kugelform annimmt, so ist es die Zellhaut, die die Gestalt der umhäuteten Zellen bedingt. Die Zellen, die embryonal verhältnismäßig klein und ziemlich einförmig gestaltet sind, wachsen nämlich zu ihren endgültigen Größen und zu ihren besonderen Formen nur durch das Flächenwachstum ihrer Zellmembranen heran. Bald ist dieses Wachstum ringsum überall gleich, bald auf die Spitze oder eine Kante der Zelle oder einen die Zelle rings umlaufenden Gürtel oder anders gestaltete, eng umschriebene Stellen beschränkt. Es kommt entweder zustande durch Dehnung der vorhandenen Membran, oder es erfolgt durch Einlagerung (Intussuszeption) neuer Substanz zwischen die Teilchen der schon vorhandenen Haut.
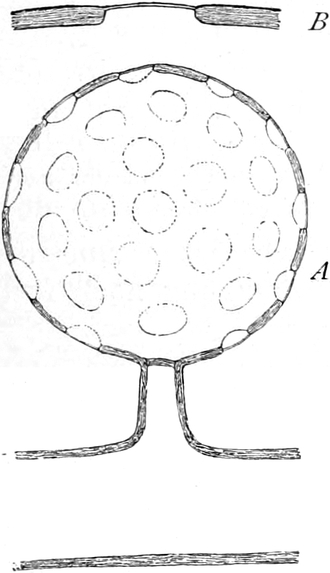
Fig. 29. A Runde, gestielte Zelle von Saprolegnia mit runden Tüpfeln in der Zellmembran. B Ein Tüpfel derselben, bei stärkerer Vergrößerung im optischen Querschnitt.
Fig. 30. Steinzelle aus der Walnußschale mit Membranschichtung und verzweigten Tüpfelkanälchen. Die unvollständig gezeichneten Tüpfelkanäle verlaufen schräg zur Ebene der Zeichnung. ROTHERT, frei nach REINKE.
Die Zellwand dient auch dem Schutze und ferner vor allem der Festigung des Protoplasten. Diese wird durch Spannung der Membran (Turgor, vgl. S. 191) und durch Dickenwachstum der Zellhaut erreicht. Wie die Zelle durch das Flächenwachstum der Membran ihre endgültige Form erhält, so bekommt die Membran durch das Dickenwachstum ihre endgültige, bezeichnende Struktur. Die Zellmembranen, die zuerst sehr zarte, dünne und strukturlose Häute sind, werden nämlich weiterhin gewöhnlich ringsum überall gleich oder nicht überall gleichmäßig verdickt, und zwar in der Weise, daß sie an einzelnen Stellen verhältnismäßig dünn bleiben, während sie an anderen viel stärker in die Dicke wachsen. In vielen Zellen wird die ganze Zellhaut mit Ausnahme kleiner rundlicher (kreisförmiger, elliptischer) oder spindelförmiger Stellen, Tüpfel, verdickt; so entstehen in verdickten Zellmembranen Grübchen (Fig. 29) oder röhrenförmige Kanäle (Fig. 30), die Tüpfelkanäle, die die Verdickungsschichten durchsetzen, an einem Ende aber, zumeist dem äußeren, durch unverdickte Zellhautteile, die Schließhaut des Tüpfels, abgeschlossen sind (Fig. 29 B). Nicht selten werden in gewissen Zellen mehrere Tüpfelkanäle bei weiter fortschreitender Verdickung der Membranen zu einem einzigen Kanale vereint. Solche verzweigte Tüpfel pflegen sehr eng zu sein und kommen vornehmlich stark verdickten und harten Zellwänden zu, so denen der Steinzellen oder Sklereïden (Fig. 30). In anderen Zellen nimmt dagegen die Zellhaut im allgemeinen nur wenig an Dicke zu, indem die Verdickung nur auf eng umgrenzte Teile beschränkt bleibt, die dadurch die Form von Höckern, Warzen, einfachen oder verzweigten Zäpfchen (Fig. 31), Stacheln (Fig. 32), Leisten, Netzen oder Bändern (Fig. 67, 68) von charakteristischem Bau erhalten. Solche Verdickungen sitzen der Zellhaut bald außen, bald innen auf (zentrifugale, zentripetale Verdickungen). Kleine nach außen vorspringende Höcker kommen z. B. an den meisten Haaren vor; besonders mannigfaltig werden solche Verdickungen ausgebildet auf den Außenflächen von Sporen und Pollenkörnern (Fig. 32) und in vielen wasserleitenden Zellen der höheren Pflanzen (Fig. 67, 68).
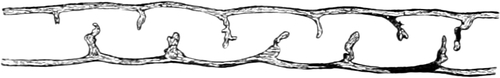
Fig. 31. Stück einer schlauchförmigen Zelle (Rhizoid) des Lebermooses Marchantia mit okalen, zapfenförmigen Wandverdickungen. Vergr. 240.
Wandverdickungen können sehr seltsame Form annehmen, wenn sie auf kleine Stellen in einer Zelle beschränkt sind, so ganz besonders bei den Zystolithen, z. B. in den Blättern von Ficus elastica (Fig. 33): zentripetalen Wandverdickungen von der Form traubenförmiger gestielter Körper, in die sehr viel Kalziumkarbonat eingelagert ist.
Das Dickenwachstum, das schon während des Flächenwachstums der Zellhaut zu beginnen pflegt, aber auch nach dessen Beendigung noch fortdauern kann, erfolgt meist durch Substanzanlagerung (Apposition) von dem Protoplasma aus an die bereits vorhandenen dünnen Häute, und zwar in Form neuer Membranlamellen. So entsteht in Zellen, in denen der größte Teil der Zellhaut verdickt wird, gewöhnlich eine schalenförmige Schichtung der Zellmembranen (Fig. 30): in den Verdickungsschichten wechseln meist dickere, dichtere Lamellen mit dünneren, weniger dichten, wasserreicheren und oft auch chemisch von den dichteren verschiedenen Lamellen ab. Die dichteren brechen das Licht stärker als die dünneren, erscheinen infolgedessen heller und leuchtender. Auch viele scheinbar homogene Zellhäute lassen nach Quellung mit starken Säuren oder Alkalien solche Schichtung deutlich erkennen.
Fig. 32. A Pollenkorn des Kürbis in Flächenansicht und zum Teil auch im optischen Durchschnitt. Das Präparat war mit Zitronenöl durchsichtig gemacht worden. Vergr. 240. B Teil eines Querschnittes durch die Pollenhaut von Cucurbita verrucosa. Vergr. 540. Nach STRASBURGER.
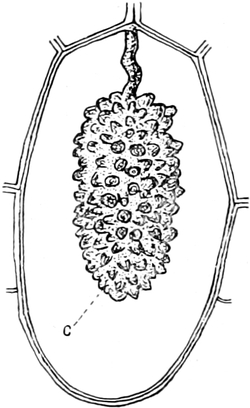
Fig. 33. Zystolithenzelle von Ficus elastica. c Zystolith. Vergr. 240.
Nicht selten beruht das Dickenwachstum aber auch auf Substanzeinlagerung (also Intussuszeption).
Besonders zentrifugale Wandverdickungen kommen oft durch Intussuszeptionswachstum zustande. Solches kann auch fern vom Protoplasma stattfinden und mit chemischen und strukturellen Differenzierungen der Zellhäute verbunden sein, so daß solche Membranen fast wie lebende Gebilde erscheinen. An Zellen aber, die durch freie Zellbildung entstanden sind, wie z. B. bei den Askosporen, werden die zentrifugalen Wandverdickungen von dem Periplasma ausgebildet, aus dem die Zellen herausgeschnitten worden sind (vgl. S. 22). Ebenso werden die zentrifugalen Verdickungen bei Pollenkörnern und vielen Sporen von außen her durch die Tätigkeit von Tapetenzellplasma aufgelagert, das die Behälter der Sporen oder Pollenkörner innen auskleidet. Nach Auflösung der Tapete verschmelzen nämlich ihre Protoplasten zu einem Periplasmodium, das die Sporen- oder Pollenanlagen allseitig umgibt[37].
In manchen Fällen sieht man in den Verdickungsschichten einer Membran bei Betrachtung von der Fläche feine Streifen (Fig. 34), die schräg zur Längsachse der Zelle verlaufen. Diese Streifung beruht entweder auf einer Sonderung jeder Verdickungslamelle in abwechselnd verschieden dichte Streifen, wovon die dichteren oft in das Zellinnere vorspringen, oder, bei vielen Algen (z. B. Cladophora), auf einer wellblechartigen Fältelung der einzelnen Lamellen. Ist die Wandung deutlich geschichtet, so sind die Streifen in den aufeinander folgenden Verdickungslamellen meist entgegengesetzt geneigt (Fig. 34).
Chemie der Zellmembranen[38]. Trotz diesen Wachstumsvorgängen ist die Zellmembran von Anfang an kein lebender Teil des Protoplasten, sondern ein Ausscheidungsprodukt von ihm, das sich im Laufe der Zeit noch in verschiedener Weise, auch chemisch, verändern kann. In lebenden Zellen ist sie stets von Wasser durchtränkt und gequollen, schrumpft infolgedessen bei Wasserentziehung mehr oder weniger zusammen. Ihre Lamellen bestehen aus Kohlehydraten, vor allem aus Zellulosen, doch teilweise auch aus Hemizellulosen und Pentosanen, meist aus mehreren dieser Verbindungen zugleich. In keinem Falle also sind die pflanzlichen Membranen nur aus reinen Zellulosen aufgebaut, auch nicht, wenn man kurz von Zellulosemembranen spricht. Die Zellulosen kommen in den Membranen aller Pflanzen vor, mit Ausnahme der meisten Pilze; es sind Polysaccharide von der Zusammensetzung (C6H10O5)n, die sich in Jodlösung nicht, mit Chlorzinkjodlösung aber intensiv blau färben. Die gleiche Reaktion gilt übrigens für viele Hemizellulosen, die ebenfalls Polysaccharide sind. Die Zellhäute enthalten fast stets in größeren Mengen auch noch andere Substanzen, z. B. auch solche, die sich mit Chlorzinkjod nicht bläuen, sondern anders färben. Unter ihnen sind die Pektinstoffe besonders wichtig, die mit diesem Reagens gelbbraune Färbung annehmen. Darauf beruht es, daß viele „Zellulosemembranen“ sich mit Chlorzinkjod nicht rein blau, sondern violett, braunviolett oder braun färben. In den Membranen der meisten Pilze und Bakterien ist Chitin vorhanden, das früher als spezifisch tierischer Membranstoff galt; es soll bei den Pilzen die Zellulose vertreten[39].
Fig. 34. Teil einer Sklerenchymfaser von Vinca major bei oberer Einstellung. Auch die inneren Grenzen der Wand wurden bei tieferer Einstellung in das Bild eingetragen. Vergr. 500. Nach STRASBURGER.
Die Zellulosen sind unlöslich in verdünnten Säuren, in Alkalien, selbst konzentrierter Kalilauge. Dagegen sind sie unter schwacher Hydrolyse löslich in Kupferoxydammoniak und, unter Umwandlung in Dextrose, in konzentrierter Schwefelsäure oder sehr stark konzentrierter Salzsäure. Ferner werden sie durch ein besonderes Enzym, die Zellulase, das die Pflanze bildet, und zwar in diesem Falle über das Disaccharid Zellobiose in Dextrose übergeführt. Nach vorausgegangener Behandlung mit Schwefelsäure oder Phosphorsäure werden sie durch wäßrige Jodlösung blau gefärbt, ebenso bei gleichzeitiger Einwirkung der konzentrierten Lösungen bestimmter Salze, wie Chlorzink oder Chloraluminium, mit Jod. Daher ist das gebräuchlichste Reagens, um Blau- oder Violettfärbung der Zellulosen zu erzielen, eben Chlorzinkjodlösung. Eine Reihe von Stoffen, die den Zellulosen nahe stehen, aber schon durch verdünnte Säuren in lösliche, von der Dextrose verschiedene Zuckerarten (z. B. Mannose, Galaktose) umgewandelt werden, faßt man als Hemizellulosen zusammen. Besonders reich daran sind die Pflanzenschleime und die Reservezellulosen (vgl. S. 36). Einige von ihnen sind in Kupferoxydammoniak unlöslich. So wie die Zellulosen hochmolekulare Polysaccharide von Hexosen (C6H12O6) sind, so sind die Pentosane (C5H8O4)n entsprechende hochmolekulare Kondensationsprodukte von Pentosen (C5H10O5), z. B. von Arabinose, Xylose. Die Pektine sind durch die Leichtigkeit ausgezeichnet, womit sie sich, nach vorhergegangener Behandlung mit verdünnten Säuren, in Alkalien lösen. Sie färben sich im Gegensatz zur Zellulose mit Safranin und Methylenblau intensiv. Die Pektine sind verwickelt gebaute Verbindungen, worin an Tetragalakturonsäure (C24H34O25, einem Kondensationsprodukt der Galakturonsäure C6H10O7) Monohexosen, Pentosane, ferner esterartig Methylalkohol und salzartig Kalzium und Magnesium gebunden sind[40]. Anwesenheit von Pektinen bedingt die Gelatinierung von Fruchtdekokten (also die Bildung von Fruchtgelees).
Das Chitin ist ein stickstoffhaltiges Polysaccharid (C30H50O19N4), das Azetylessigsäure in säureamidartiger Bindung enthält.
Die Zellhäute erfahren im Laufe des Lebens einer Zelle oft mannigfache chemische Umwandlungen dadurch, daß die bereits ausgebildeten Schichten ihre Beschaffenheit ändern oder die neuen Verdickungsschichten in ihrer Zusammensetzung von den vorhandenen abweichen. Diese Umwandlungen stehen oft in engster Beziehung zu den Anforderungen, die an die Zellen gestellt werden. Was zunächst die „Zellulose“membranen betrifft, so sind sie, ganz jung, wenig elastisch, dagegen, wie es mit Rücksicht auf das bevorstehende starke Längenwachstum günstig erscheint, verhältnismäßig stark dehnbar; später pflegt sich das umzukehren. Sie setzen der Diffusion von Wasser und gelösten Substanzen kaum Widerstand entgegen.
Nicht selten verschleimen Zellulosemembranen durch Umwandlung ihrer Substanz in gallertige oder schleimartige, in Wasser stark quellende Massen. Besonders oft tritt aber Verholzung, Verkorkung und Kutinisierung der Zellmembranen ein. Verholzung der Membranen verringert die Dehnbarkeit der Zellen ganz bedeutend, erhöht also die Starrheit, ohne die Durchlässigkeit für Wasser und darin gelöste Stoffe aufzuheben. Verkorkte und kutinisierte Membranen aber sind verhältnismäßig undurchlässig für Wasser und Gase und setzen die Verdunstung stark herab. Häufig werden auch die Zellhäute nachträglich durch Derivate von Gerbstoffen sehr dunkel gefärbt und gegen Fäulnis geschützt, so in Samenschalen und in älterem Holz. In jede ältere Membran sind ferner anorganische Stoffe unter Umständen in bedeutender Menge eingelagert, sehr häufig Kieselsäure, seltener Kalziumkarbonat, ferner organische Salze, z. B. besonders häufig Kalziumoxalat.
Die Verholzung beruht auf der Einlagerung von Ligninen in die Kohlehydratlamellen. Die chemische Zusammensetzung der Lignine ist aber noch wenig geklärt. Wahrscheinlich sind Benzolderivate an ihrer Zusammensetzung beteiligt. In den Zellen, deren Membranen verholzt sind, bestehen aber die innersten Membranschichten in vielen Fällen aus Zellulose. Als besonders charakteristische Reaktionen verholzter Zellwände gelten: Gelbfärbung mit schwefelsaurem Anilin, Rotfärbung mit Phloroglucin und Salzsäure. Diese Reaktionen werden wohl durch aromatische Stoffe bewirkt, die in den verholzten Membranen vorkommen. Mit Chlorzinkjodlösung färben sich verholzte Membranen gelb, nicht blau. Der Holzstoff läßt sich technisch aus den verholzten Membranen durch längeres Kochen mit Kalziumbisulfit- oder Natronlauge unter Druck herauslösen (in mikroskopischen Schnitten auch durch Eau de Javelle), so daß nur die Kohlehydratlamellen zurückbleiben. In dieser Weise stellt man aus Holz „Zellulosezellstoff“ her.
Die Verkorkung beschränkt sich in der Regel auf die mittleren Verdickungsschichten einer Membran. Die verkorkten Lamellen bestehen nur aus Suberinen, enthalten also keine Kohlehydrate; sie werden den unverkorkten Membranlamellen angelagert. Mit der Verkorkung nicht völlig übereinstimmend, wenn ihr auch nahe verwandt, ist die Kutinisierung. Sie besteht in einer nachträglichen Auflagerung von Kutinen auf Zellulosemembranen oder einer Einlagerung in solche. Zwischen Kutinen und Suberinen bestehen keine scharfen Unterschiede. Beide nehmen mit Chlorzinkjodlösung gelbbraune, mit Kalilauge annähernd gleiche gelbe Färbung an, färben sich mit Sudanglyzerin rot, und beide werden durch konzentrierte Schwefelsäure oder Kupferoxydammoniak nicht gelöst. Doch widerstehen die Kutine besser der Kalilauge. Die Kutine und die Suberine verhalten sich übrigens je nach ihrer Abstammung gegen Reagenzien etwas verschieden. Die Suberine sollen nach VAN WISSELINGH[41] fettartige Körper sein aus Glyzerinestern und anderen zusammengesetzten Estern der Phellon-, Suberinsäure und anderen höheren Fettsäuren; den Kutinen soll dagegen die Phellonsäure, die in den Suberinen stets vorhanden ist, immer fehlen.
Kalziumkarbonat kommt bei manchen Pflanzen, wie den meisten Characeen unserer Seen und Teiche, so massenhaft in den Membranen vor, daß diese starr und brüchig werden. Kieselsäure ist in den peripherischen, dadurch sehr harten Zellwänden der Gräser, Schachtelhalme und vieler anderer Pflanzen, z. B. der einzelligen Diatomeen, vorhanden. Das Kalziumoxalat ist meist in Kristallen ausgeschieden.
Auch die zur Flavongruppe gehörenden Farbstoffe der technisch benutzten Farbhölzer haben ihren Sitz in den Membranen.
Feste Zellmembranen können nachträglich in Gummi umgewandelt werden, so bei der Gummosis in einem Holzkörper. Bei Prunus- oder Citrus-Arten spielt sich dieser Vorgang so ab, daß nacheinander die einzelnen Verdickungsschichten der Zellwände zu Gummi verquellen. Schließlich wird auch der Zellinhalt zu einem Bestandteil der Gummimasse[42]. Der Gummi ist chemisch den Pflanzenschleimen sehr ähnlich (vgl. S. 32).
Röntgenspektroskopische Untersuchungen der letzten Zeit machen es wahrscheinlich, daß die Zellulosemembranen wie die Stärke kristallinische Struktur haben. Sie bestehen aus Kristalliten, die mit einer ihrer Hauptachsen parallel zur Längsachse der Zelle angeordnet sind[43].
Zweiter Abschnitt. Gewebelehre (Histologie)[44].
I. Die Gewebebildung.
A. Begriffsbestimmung und Bedeutung des Zellgewebes. Jeder innigere Verband umhäuteter Protoplasten wird als Zellgewebe bezeichnet.
Nur die niedersten Organismen bestehen aus einem ein- oder mehrkernigen Protoplasten; sie sind zeitlebens einzellig. Meist ist aber der Körper einer Pflanze vielzellig, d. h. er setzt sich aus vielen, voneinander durch Zellwände getrennten Protoplasten, also aus Zellgewebe, zusammen. Höhere äußere Organisation und größeres Körpervolumen sind nämlich bei den weitaus meisten Pflanzen an die Ausbildung vieler umhäuteter Protoplasten gebunden. Freilich gibt es, wie wir schon sahen, auch äußerlich hochorganisierte Algen (die Schlauchalgen), bei denen eine solche Kammerung nicht vorkommt, sondern das Innere von einem vielkernigen Protoplasten eingenommen wird. Man kann sie als nicht zellige Organismen den zellulären gegenüberstellen. Solche Organismen gibt es aber nur wenige. Ausbildung von Zellgewebe war eben für die Entwicklung höher organisierter Pflanzenformen offenbar von größter Bedeutung. Sie ermöglichte es, eine Arbeitsteilung im Protoplasma des Körpers durchzuführen. Durch die Zerteilung des Protoplasmas in viele Protoplasten entstanden ebensoviele einzelne Elementarteile, die verschiedene Aufgaben übernehmen konnten, und vergrößerte sich außerdem die Plasmaoberfläche ganz erheblich. Durch die Ausbildung der trennenden Zellwände wurde es ferner möglich, diese Elementarteile mehr oder weniger gegeneinander zu isolieren, zugleich den Zusammenhalt und die innere Aussteifung des ganzen, aus vielen weichen Protoplasten bestehenden Körpers zu erhöhen.
Ein, freilich sehr unvollkommenes, lockeres Gewebe bildet sich schon bei solchen Organismen, deren Zellen nach jeder Teilung sich voneinander trennen, aber durch eine Gallerte aus ihren verquellenden Zellhäuten zusammengehalten werden. Man nennt derartige Verbände mehr oder weniger selbständiger Zellen gemeinsamen Ursprungs Zellfamilien oder Zellkolonien. Mannigfaltige Beispiele dafür bieten uns die Spaltalgen (Fig. 35) und die Ordnungen der Volvocales und der Protococcales unter den Grünalgen (vgl. diese). In den Zellfäden und Zellflächen niederer Algen, deren Zellen bereits fest verbunden sind, beginnen allmählich die Merkmale geschlossener Gewebe hervorzutreten. Diese Merkmale werden mit wachsender Zellenzahl im Organismus und mit der fortschreitenden Arbeitsteilung zwischen den Zellen immer deutlicher.
Fig. 35. Gloeocapsa polydermatica. A Beginn einer Teilung. B Links: kurz nach der Teilung. C Im Ruhezustande. Vergr. 540. Nach STRASBURGER.
Fig. 36. Längsschnitt durch das Mutterkorn Vergr. 300. Nach SCHENCK.
Fig. 37. Längsdurchschnitt durch den Stiel des Fruchtkörpers des Steinpilzes. Vergr. 300. Nach SCHENCK.
B. Ursprung der Gewebe. Die Entstehung pflanzlicher Gewebe ist im allgemeinen auf Zellteilungen zurückzuführen. Bei manchen niederen Algen, z. B. bei Hydrodictyon, werden aber Gewebe durch Anlagerung freier Zellen aneinander und durch Verwachsung ihrer Zellmembranen, bei den Pilzen und Schlauchalgen (Siphoneen) durch Verflechtung schlauchförmiger Zellen oder Zellfäden gebildet (Flechtgewebe oder Plectenchym, Fig. 37). Kommt es dabei zu einer innigen Verwachsung der verflochtenen Zellen und ist dieses Geflecht besonders dicht, so macht es in dünnen Schnitten einen ganz ähnlichen Eindruck wie ein Gewebe der höher organisierten Pflanzen (Fig. 36); bei nachträglicher Verdickung der Wände können sogar die Tüpfel in den nachträglich miteinander verwachsenen Zellhäuten aufeinander treffen.
C. Die Zellmembranen im Zellgewebe. Betrachtet man Schnitte durch pflanzliches Zellgewebe bei schwächeren Vergrößerungen, so sind es meist ausschließlich oder vor allem die Zellmembranen, die ins Auge fallen; sie scheinen bei weniger genauem Zusehen ein Netzwerk von Fäden, ähnlich einem Stoffgewebe, zu bilden, woraus sich der Name Zellgewebe erklärt.
1. Schichtung. Alle Scheidewände, die bei den Zellteilungen im Zellgewebe auftreten, sind, wie auch sonst bei Zellteilungen, zunächst einfache und sehr dünne, meist plattenförmige Membranlamellen, die den benachbarten Zellen gemeinsam zukommen. In diesem Zustande bleibt die Zellmembran aber nie. Sie wird schon in den embryonalen Zellen verdickt, während die Zellen durch Flächenwachstum der Membranen sich vergrößern. Die Verdickung erreicht aber ihr Ende erst, nachdem die Zellen längst zu ihren endgültigen Größen herangewachsen sind. Sie fällt verschieden aus, je nach den Funktionen, die die ausgebildeten Dauerzellen übernehmen: besonders dicke Zellmembranen findet man bei Zellen, die der mechanischen Festigung dienen (Fig. 38). In der Regel wird die Verdickung einer Scheidewand von beiden angrenzenden Protoplasten aus, und zwar meist durch beiderseitige Anlagerung einer gleichen oder ungleichen Zahl neuer schalenförmiger Membranlamellen an die dünne Scheidewand besorgt (Fig. 38, 40, 62). So bekommt eine jede Zelle nachträglich ihre eigenen Membranschichten. Die den benachbarten Zellen gemeinsame mittlere Membranlamelle einer Zellhaut bezeichnet man alsdann als Mittellamelle (Fig. 38 m). Sie ist meist sehr dünn, nur an den Zellecken und Kanten etwas dicker (Zwickel, Fig. 71 C m*) und besteht hauptsächlich aus kalziumhaltigen Pektinstoffen, die verhältnismäßig leicht löslich sind; in verholzten und verkorkten Geweben ist sie außerdem oft verholzt.
In weichen Geweben lassen sich die Zellen schon durch Kochen in Wasser voneinander trennen, das die Mittellamellen zum Verquellen bringt, z. B. bei vielen Kartoffelknollen. In vielen reifen Früchten tritt eine solche Isolierung von selbst ein. Durch das SCHULZEsche Mazerationsgemisch (chlorsaures Kali und Salpetersäure) oder durch heiße konzentrierte Ammoniaklösung gelingt es, auch andere Zellen durch Auflösung der Mittellamellen voneinander zu lösen, durch das Mazerationsgemisch z. B. die des Holzes. Auch gibt es pektinvergärende Bakterien, die mittels des Enzyms Pektinase die Mittellamellen zerstören und gewisse Zellen, z. B. bei der Flachsrotte die mechanischen Zellen der Flachsstengel von den anderen Zellen, trennen.
Die Verdickungsschichten unterscheiden sich meist optisch und chemisch von der Mittellamelle; da sie sich in der Regel zu beiden Seiten der Mittellamelle gleichmäßig anlagern, so erhält die Scheidewand zwischen zwei Zellen mehr oder weniger symmetrischen Bau (Fig. 38–40, 41, 62), der sich selbst auf die Tüpfel erstreckt. Nicht selten ist in stärker verdickten Zellhäuten, besonders den Zellen des Holzes, beiderseits der Mittellamelle eine Sonderung in drei, ihrem optischen und chemischen Verhalten nach verschiedene Schichten zu erkennen, die sich als primäre, sekundäre und tertiäre Verdickungsschichten unterscheiden lassen und selbst wieder aus vielen Lamellen bestehen können. Am stärksten pflegt alsdann die sekundäre Verdickungsschicht entwickelt zu sein; sie bildet die Hauptmasse der Wandung. Die innerste Verdickungsschicht einer Zellhaut ist meist stärker lichtbrechend; sie wird als Grenzhäutchen oder Innenschicht bezeichnet (Fig. 71 Ci) und besteht meist aus Zellulose.
Zellwände, die nicht an andere Zellen grenzen (Fig. 40, 44), vor allem also die Außenwände an der Peripherie des Pflanzenkörpers, sind dagegen asymmetrisch gebaut. Bei solchen Wänden können ja nur einseitig nach dem Zellinnern hin Verdickungslamellen an die zunächst allein vorhandene dünne Zellhaut angelagert werden.
Fig. 38. Stark verdickte Zellen aus dem Marke eines älteren Stammstückes der Waldrebe Clematis vitalba. m Mittellamelle, i Interzellularraum, t Tüpfelkanäle in Seitenansicht. In der einen Zelle ist die untere Wand w mit den Tüpfeln in Aufsicht zu sehen. Vergr. 300. Nach SCHENCK.
2. Tüpfelung. Die Zellmembranen, die die Protoplasten voneinander trennen, erschweren begreiflicherweise den Stoffaustausch zwischen den Zellen, und zwar um so mehr, je dicker sie sind. Ohne regen Stofftransport von Zelle zu Zelle kann aber das Leben des ganzen Organismus nicht bestehen. So muß also dafür gesorgt werden, daß die Verdickung der Membranen, die der Festigung dient, die Stoffbewegung nicht allzusehr hemmt. Diesem Bedürfnis wird meist durch Ausbildung von Tüpfeln in den Scheidewänden zwischen den Protoplasten Rechnung getragen. In den freien Wänden findet man dagegen in der Regel keine Tüpfel.
Diese Tüpfel, die in stärker verdickten Zellmembranen Kanäle mit kreisrundem (Fig. 38 bei w und 39 bei m), elliptischem oder spaltenförmigem Querschnitte sind, treffen in den benachbarten Zellen aufeinander; sie sind also beiden Zellen gemeinsam, werden aber in der Mitte von der unverdickten Zellhaut, ihrer Schließhaut, durchsetzt (Fig. 38 t, 39 p, 40 t). Spaltenförmige Tüpfel pflegen schräg gerichtet zu sein und in den Verdickungsschichten benachbarter Zellen einander zu kreuzen.
Der Bau der Tüpfel läßt sich besonders leicht untersuchen an den stark verdickten und reichlich getüpfelten Zellwänden der Samen verschiedener Palmen, zahlreicher Liliaceen, z. B. von Ornithogalum (Fig. 39), und anderer Monokotylen. Die Verdickungsschichten bestehen hier aus einer Hemizellulose, die ein Reservestoff des Samens ist und bei der Keimung durch ein Enzym (Zytase) aufgelöst wird. Sie sind glänzend weiß und können so hart werden, daß solche Samen, z. B. die der Palme Phytelephas macrocarpa, technisch als „vegetabilisches Elfenbein“ zur Anfertigung von Knöpfen u. dergl. verwertet werden.
Fig. 39. Zellen aus dem Samen (Endosperm) der Liliacee Ornithogalum umbellatum. m Tüpfel von oben, p Tüpfelkanal in Seitenansicht mit der Schließhaut. n Zellkern. Vergr. 240. Nach STRASBURGER.
Fig. 40. Zellen aus der Wurzelrinde von Iris florentina. t Tüpfel in den geschichteten Zellmembranen, i Interzellularen. Vergr. gegen 400.
3. Verbindung der Protoplasten im Gewebe. Ein harmonisches Zusammenarbeiten aller lebenden Teile des Körpers, wie es in den Lebensäußerungen des gesamten Organismus so auffällig zutage tritt, wäre freilich wohl kaum möglich, wenn die lebenden Protoplasten im Zellgewebe des Körpers durch die Zellwände völlig getrennt nebeneinander liegen würden. Tatsächlich sind sie nicht ganz gegeneinander abgeschlossen, sondern durch zahlreiche, äußerst feine Protoplasmafäden verbunden, die von ihren Hautschichten ausgehen und die Zellhäute durchsetzen. Meist sind diese Plasmaverbindungen oder Plasmodesmen[45], die sämtliche lebende Zellen des Körpers verbinden, auf die Schließhäute der Tüpfel beschränkt (Fig. 41 s); doch können sie auch die Zellhäute außerhalb der Tüpfel durchsetzen (Fig. 42 pl). Sie erheben die Protoplasten des ganzen Pflanzenkörpers trotz der Ausbildung der Zellwände zu einer organischen, lebenden Einheit und dienen wohl ebenfalls zur Stoff- und außerdem zur Reizleitung von Protoplast zu Protoplast.
4. Zellfusionen. Die Lebenstätigkeit des vielzelligen Organismus macht es aber auch nötig, Stoffe noch schneller, als es selbst durch weite Tüpfelkanäle möglich ist, innerhalb seines Körpers von einem Organ in ein anderes, etwa aus den Wurzeln in die Blätter, zu schaffen. Die Diffusion von Stoffen durch die Zellmembranen oder die Stoffbewegung in den äußerst feinen Plasmodesmen genügt dazu vielfach nicht, wenn sie auch durch die Ausbildung der Tüpfelkanäle sehr erleichtert wird, die ja in den Scheidewänden zwischen benachbarten Zellen stets korrespondieren. Dementsprechend verschmelzen viele, besonders dem Stofftransporte dienende, außerdem aber auch manche andere Zellen, nachträglich durch breite offene Löcher zu zusammenhängenden Röhren (vgl. S. 54, 55 u. 59), zu Zellfusionen miteinander. Solche Löcher in Ein- oder Mehrzahl entstehen alsdann durch entsprechende Auflösung der Wandsubstanz in den Zwischenwänden, namentlich in den Endwänden benachbarter Zellen.
Fig. 41. Eine Zelle aus der Rinde der Mistel (Viscum album) nach entsprechender Härtung und Färbung der Protoplasten und Quellung der Wände (m). Die Schließhäute (s) der Tüpfel von Plasmodesmen durchsetzt, ch Chloroplasten, n Zellkern. Vergr. 1000. Nach STRASBURGER.
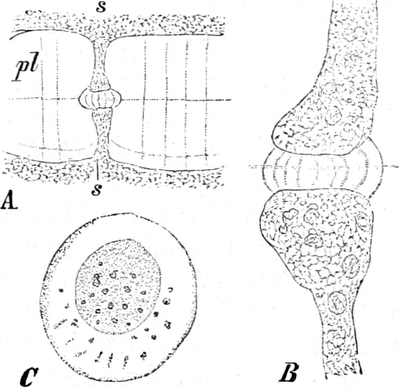
Fig. 42. A Ein etwas gequollenes Wandstück aus dem Endosperm der Elfenbeinpalme (Phytelephas macrocarpa). Bei s und s die aufeinander treffenden, mit Plasma gefüllten Tüpfelkanäle der beiden angrenzenden Zellen, in der Schließhaut zarte Plasmodesmen, außerdem die ganze Dicke der Zellwand durchsetzende Plasmodesmen pl. Vergr. 375. B Die Tüpfelkanäle und die Plasmodesmen der Schließhaut 1500mal vergrößert. C Tüpfelkanal und Schließhaut von der Fläche gesehen, bei 1500facher Vergrößerung. Der kleinere Kreis ist der Tüpfelkanal, der größere die Schließhaut, die dunkleren Punkte darin sind die Plasmodesmen. Nach STRASBURGER.
5. Bildung von Interzellularen und Durchlüftung der Gewebe. Fast immer, wenn sich embryonale Zellen in Dauerzellen umwandeln, werden die Mittellamellen nach Ausbildung von Verdickungsschichten lokal, namentlich an den Ecken und Kanten der Zellen, gespalten, so daß hier die Wände benachbarter Zellen auseinander weichen können. So entstehen im Zellgewebe schon sehr frühzeitig, bis in die äußersten Stengel- und Wurzelspitzen hinein, lufterfüllte Zwischenzellräume (Interzellularen, Fig. 38 i, 40 i). Meist haben sie im Querschnitt die Form kleiner Drei- oder Vierecke, die der erwähnten Spaltung der Zellwand ihre Entstehung verdanken und daher schizogen genannt werden. Die Interzellularen bilden ein zusammenhängendes System (Interzellularsystem) reich verästelter feiner Kanäle, die den Zellkanten entlang streichen und das Gewebe allseitig durchziehen. Bei bevorzugtem Wachstum bestimmter Zellwandstellen können derartige schizogene Interzellularen benachbarte Zellen nachträglich völlig voneinander trennen und zu größeren Kammern oder Gängen von mehr oder weniger regelmäßiger Gestalt erweitert werden. Auch durch Zerstörung von Zellen kann die Bildung von Zwischenräumen veranlaßt werden; solche auf Zerreißung von Zellen zurückzuführende Interzellularräume heißen rhexigen, durch Auflösung von Zellwänden entstehende lysigen. In manchen Fällen werden schizogene Interzellularen weiterhin rhexigen oder lysigen vergrößert. Ungleich verteiltes Wachstum führt oft zu einer Dehnung und Zerreißung ganzer Gewebegruppen. Auf diese Weise entstehen z. B. die hohlen Stengel. In Geweben, die sich durch Verflechtung von Zellfäden gebildet haben, sind die Zwischenzellräume von vornherein vorhanden (Fig. 37).
Die Interzellularen enthalten gewöhnlich Luft und sind für die lebenden Gewebezellen von größter Bedeutung. Eine Zelle, die allseits von Wasser oder Luft umspült ist, findet jederzeit in ihrer Umgebung leicht die Gase, die sie zum Leben braucht. Die zahllosen Protoplasten in den Geweben der vielzelligen Pflanzen würden aber nicht lebensfähig sein, wenn nicht dafür gesorgt wäre, daß auch zu ihnen solche Gase gelangen können. Diese Aufgabe, die Gase im Innern der Gewebe zirkulieren zu lassen, erfüllen die Interzellularräume.
II. Zellarten, Gewebearten und Gewebesysteme.
Nur bei den niederen mehrzelligen Pflanzen besteht das Zellgewebe des Körpers aus lauter ziemlich gleichartigen kugelförmigen, polyëdrischen oder zylindrischen Zellen (vgl. z. B. Fig. 84), die sämtlich in fast gleicher Weise allen Lebensfunktionen dienen. Man kann diese Gewebe Parenchym nennen. In dem Maße, wie mit fortschreitender äußerer Organisation und mit Zunahme der Größe des Organismus die Arbeitsteilung zwischen den Protoplasten zunimmt, erhalten Zellen einzeln oder gruppenweise verschiedene Form, verschiedenen Bau und besondere Aufgaben. So entsteht namentlich bei den höheren Pflanzen eine Sonderung der gleichartigen Zellen in eine Anzahl verschieden gebauter Zellarten, zwischen denen es aber immer Übergänge gibt. Untersucht man vergleichend die verschiedensten Organe einer Pflanze und aller höher organisierten Pflanzen miteinander, so findet man, daß die Zahl dieser verschiedenen Zellarten klein ist und daß bestimmte Zellformen überall wiederkehren.
Meist sind gleichartige Zellen zu Gruppen verbunden. Einen solchen Verband aus lauter gleichartigen Zellen nennt man eine Gewebeart. Die Gewebearten unterscheiden sich durch die Formen, den Inhalt und den Membranbau der Zellelemente, aus denen sie bestehen; eine jede Gewebeart hat ihre besonderen Aufgaben, die in einer Hauptfunktion oder in mehreren Funktionen bestehen können. Je höher die Pflanze organisiert ist, um so mehr Gewebearten setzen ihren Körper zusammen. Doch ist entsprechend den Zellarten auch die Zahl der Gewebearten klein, da sie in gleicher Weise bei den verschiedensten Gewächsen immer wieder auftreten. Nicht selten kommt es vor, daß in ein Gewebe aus sonst gleichartigen Zellen einzelne Zellen (wohl auch Idioblasten genannt) oder Zellgruppen mit ganz abweichendem Bau und Inhalt eingeschaltet sind, die also einer anderen Zellart angehören.
Bei den höheren Pflanzen bilden ferner einzelne Gewebearten größere Gewebemassen, die auf weite Strecken oder durch den ganzen Pflanzenkörper in ununterbrochenem Zusammenhange stehen. Man nennt solche Verbände, die oft auch aus verschiedenartigen Gewebearten zusammengesetzt sind, morphologische Gewebesysteme. Auch derartige zusammengesetzte Gewebeverbände können durch ihre Baueigentümlichkeiten sehr auffallen und bestimmte Hauptfunktionen haben; und zwar pflegen die verschiedenen Gewebearten einander in ihren Funktionen zu ergänzen oder zu unterstützen.
Zu einem physiologischen Gewebesysteme endlich faßt man alle Zellen zusammen, die in ihren Hauptfunktionen übereinstimmen, gleichgültig ob und wie sie morphologisch verbunden und woraus sie ontogenetisch entstanden sind. Solche Systeme sind also etwas ganz anderes als die morphologischen Gewebesysteme.
Wir können sämtliche Gewebearten der höher organisierten Pflanzen in zwei Hauptgruppen teilen, nämlich 1. in die embryonalen oder Bildungsgewebe und 2. in die fertigen oder Dauergewebe.
A. Die Bildungsgewebe.
Sie werden auch Meristeme genannt. Sie bestehen aus verhältnismäßig kleinen, nach allen Richtungen ungefähr gleich großen, also isodiametrischen, würfelförmigen oder aus prismatischen, plattenförmigen oder langgestreckten, embryonalen Zellen mit dünnen Zellmembranen, reichlichem Plasma, großen Zellkernen und wenigen kleinen Vakuolen (vgl. Fig. 2). Bezeichnend für sie sind meist die zahlreichen Zellteilungen, die man in ihnen, wenigstens so lange sie tätig sind, findet. Diese Bildungsgewebe, aus denen die Dauergewebe hervorgehen, zerfallen nach den Orten ihres Vorkommens und der Art ihrer Entstehung in Urmeristeme und sekundäre Meristeme.
1. Urmeristeme. Sie entstehen durch die Teilung der Keimzelle und setzen zunächst den Embryo allein zusammen. Später sind sie hauptsächlich an den Spitzen der Zweige und Wurzeln, an den Vegetationspunkten dieser Organe (Fig. 102, 154) vorhanden. Hier findet alsdann die Vermehrung der embryonalen Zellen und die Anlage vieler Seitenorgane statt (apikales oder Spitzenwachstum).
Eine oder einige dieser Meristemzellen an der äußersten Spitze des Vegetationspunktes bleiben dauernd embryonal und vermehren durch Wachstum und darauffolgende Zellteilungen fortgesetzt die Zellen des Meristems, während die embryonalen Zellen, die durch diese Teilungen entstanden sind, sich meist nach weiteren Teilungen allmählich in Dauerzellen umwandeln. Ist eine solche Spitzenzelle vorhanden (Fig. 100, 101, 153), die alsdann meist durch Form und besondere Größe von den übrigen Meristemzellen abweicht, so spricht man von einer Scheitelzelle, sind mehrere in einer oder mehreren Schichten (Fig. 102, 154) vorhanden, von Initialzellen. Diese sind meist von den übrigen Meristemzellen der Form nach nicht zu unterscheiden; bei manchen Pflanzen ähneln sie jedoch mehr oder weniger den Scheitelzellen.
Dicht hinter dem Vegetationspunkte beginnen die annähernd gleichartigen, lückenlos verbundenen Urmeristemzellen verschieden zu wachsen und sich in Stränge und Schichten verschiedenartig gestalteter Bildungszellen zu sondern, die aber sonst zunächst die Eigenschaften der embryonalen Zellen noch behalten (Fig. 100, 102, 154). Schon hier treten Interzellularen auf. Erst in größerer Entfernung vom Vegetationspunkte bilden sich allmählich die Merkmale der verschiedenen Dauergewebe aus, basalwärts fortschreitend in immer stärkerem Maße, bis der fertige Zustand schließlich erreicht ist. Bei dieser Gewebedifferenzierung kommt es sehr häufig vor, daß Gruppen, Stränge oder Schichten von Zellen ihre meristematische Beschaffenheit beibehalten und zu Ausgangspunkten für weitere Neubildungen von embryonalen und fertigen Geweben werden. In vielen Fällen stellen sie vorübergehend eine Zeitlang ihre Teilungstätigkeit ein.
Bei vielen Monokotylen bleiben die basalen Abschnitte der Stengelglieder lange Zeit meristematisch und dienen außer dem Meristem der Vegetationspunkte als Bildungsherde für Dauergewebe, aber nicht wie dieses Meristem auch zur Bildung von Seitenorganen. Dadurch kommt das interkalare Wachstum dieser Sprosse und vieler anderer Pflanzenteile zustande.
2. Sekundäre Meristeme sind Meristeme, die aus untätig gewordenen Resten von Urmeristemen durch neue Teilungen ihrer Zellen oder als Neubildungen aus Dauerzellen entstehen, letzteres dadurch, daß diese Dauerzellen einen Funktionswechsel durchmachen und durch neue Zellteilungen sich in embryonale Zellen zurückverwandeln (Folgemeristeme). Ihre Elemente gleichen denen der Urmeristeme, haben aber in der Regel die Gestalt langgestreckter oder plattenförmiger Prismen (Fig. 167). Solche sekundären Meristeme geben den Anlaß zur Korkbildung und zum sekundären Dickenwachstum der Baumstämme und heißen Kambien. Diese Kambien sind mehr oder weniger dünne Meristemschichten (Fig. 165, 166), die als mantelförmige Hohlzylinder parallel zur Organoberfläche im übrigen Gewebe verlaufen. In den Kambien pflegt eine mittlere Schicht von Meristemzellen, die Initialzellen, durch fortgesetzte tangentiale, also gleichgerichtete Teilungen nach außen oder innen oder nach beiden Seiten in radialer Richtung Tochterzellen (Gewebemutterzellen) abzugeben, die sich ihrerseits, manchmal erst nach weiteren Teilungen, zu Dauerzellen umbilden.