ERSTER TEIL Allgemeine Botanik. (continued 3)
Reading edition
Aufrechte radiäre Stengel mit langen Internodien oder mit breiten Blättern haben oft wenige Orthostichen, solche mit kurzen Internodien oder mit schmalen Blättern meist viele. Man findet also in diesem Falle bei Schraubenstellung stets Divergenzen, die den höheren Gliedern der Reihen entsprechen.
An geneigten dorsiventralen Stengeln sind die Stellungsverhältnisse der Blätter relativ einfach. Am häufigsten ist hier 1⁄2-Stellung oder eine ähnliche Anordnung, wobei sich die Blattflächen parallel zum Horizont stellen; dadurch werden die günstigsten Verhältnisse für die Beleuchtung geschaffen. Die 1⁄2-Stellung wird überaus häufig durch Drehung der Internodien erreicht, so bei der verbreiteten dekussierten Blattstellung, die bei geneigten Achsen durch solche Drehung zu einer zweireihigen Anordnung mit einer Blattreihe rechts, der anderen links von der Achse wird. Auch bei wechselständigen Stellungen kommt ähnliches vor und ermöglicht es den Blattspreiten, das volle Oberlicht auszunutzen. So ist die Stellung der Laubblätter eine Anpassung an die Lichtbedürfnisse der Pflanzen. Bei manchen horizontal wachsenden Erdsprossen (z. B. von Farnen) stehen die Blätter in einer oder zwei Reihen auf der Oberseite.
Über die Ursachen der Blattstellungsgesetzmäßigkeiten wissen wir noch gar nichts. SCHWENDENERs Annahme, daß rein mechanische Ursachen die Anordnung der Blätter bestimmen, hat sich als unbegründet erwiesen[66]. Jedenfalls brauchen die Blätter durchaus nicht etwa in der Reihenfolge ihrer Grundspirale oder als Glieder eines Wirtels gleichzeitig am Scheitel zu entstehen; manchmal kann sogar eine Seite des Vegetationspunktes in der Erzeugung von Blattanlagen wesentlich gefördert sein. Ebensowenig nehmen sie bei Spiralstellungen als Anlagen am Scheitel stets die gleichen Stellungen ein wie am ausgewachsenen Stengel; ihre Divergenzen an letzterem werden vielmehr oft erst durch sekundäre Verschiebungen hergestellt.
B. Primärer innerer Bau des Stengels[67]. Der Stengel zeigt eine viel weitergehende Gewebedifferenzierung als die Langtriebe selbst der am reichsten gegliederten Thalli. Zu äußerst finden wir als Abschluß eine typische Oberhaut oder Epidermis. Darunter liegt in den Internodien (die verwickelter gebauten Knoten lassen wir außeracht) meist ein mehrschichtiger leitbündelfreier Gewebemantel, die Rinde, die das übrige leitbündelhaltige Gewebe des Stengels, den Zentralzylinder (Fig. 109), umschließt.
Wenn sich auch bei manchen Monokotylen eine Rinde von einem Zentralzylinder nicht unterscheiden läßt, weil die Leitbündel bis dicht unter die Epidermis gerückt sind, und auch sonst oft eine scharfe Grenze zwischen beiden fehlt, so scheint es doch praktisch, an dem viel gebrauchten Begriff Zentralzylinder festzuhalten.
Die Rinde besteht hauptsächlich aus Parenchym, und zwar bei den grünen Luftsprossen an der Peripherie vorwiegend aus chlorophyllhaltigem Parenchym, das in dicken Rinden weiter innen in farbloses (Speicher-)Parenchym übergehen kann; bei den farblosen Erdsprossen, die oft viel dicker als jene sind, besteht es nur aus farblosem Parenchym, das, ebenso wie das übrige Parenchym der Rhizome, reich an Reservestoffen ist. Häufig ist ein Teil der Rinde als Festigungsgewebe ausgebildet. Die Stengel der Luftsprosse als die Träger der Blattlast sind namentlich unter dem Einfluß des Windes der Gefahr der Knickung ausgesetzt; sie müssen allseitig biegungsfest gebaut sein. Dafür sorgt meist Festigungsgewebe, in Form von Lagen oder Strängen aus Kollenchym oder Sklerenchym, die möglichst peripher, nicht selten in vorspringenden Kanten des Stengels direkt unter der Epidermis ausgebildet zu sein pflegen (Fig. 111, 1 u. 2).
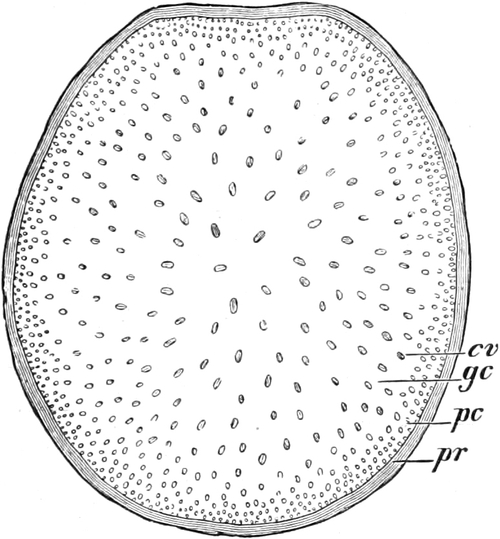
Fig. 109. Querschnitt durch ein Stengelglied des Mais (Zea mays). pr Rinde, pc Perizykel, cv Leitbündel, gc Parenchym des Zentralzylinders. Vergr. 2. Nach SCHENCK.
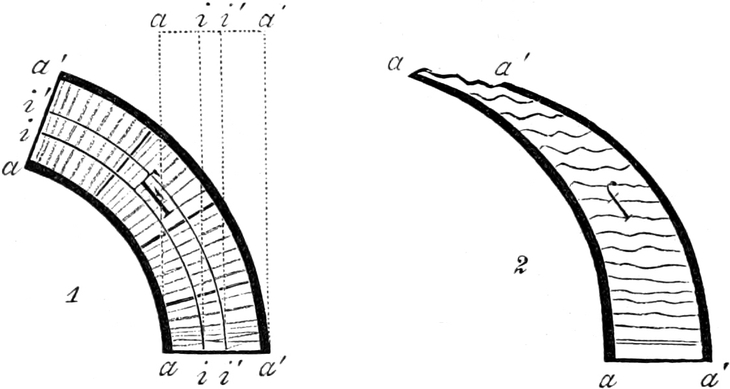
Fig. 110. 1 Längsschnitt durch einen elastischen Zylinder, vor der Biegung (punktiert) und danach (ausgezogen). F Die Füllung. Vor der Biegung alle Längskanten gleich lang; nach der Biegung die Außenkante a′ verlängert, die Außenkante a verkürzt. 2 Bei ungenügender und unwirksamer Füllung f krümmen sich die Gurtungen a und a′ leicht jede für sich, da sie dabei gleichlang bleiben können. Nach NOLL.
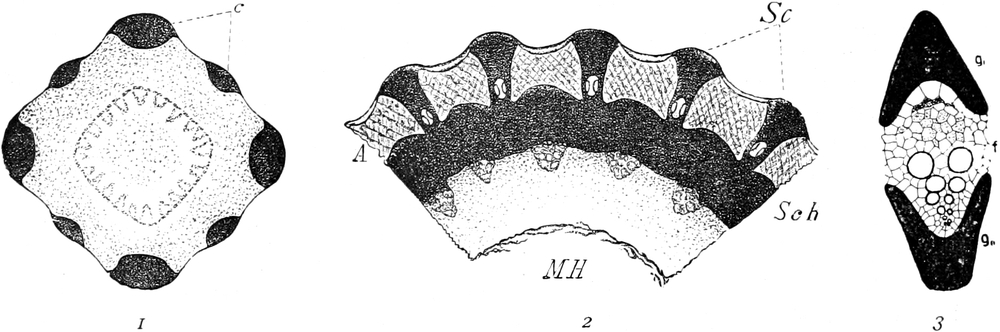
Fig. 111. Biegungsfeste Konstruktionen des Stengels. 1 Querschnitt durch einen jungen Sambucussproß. c Kollenchymbündel. Die innere punktierte Figur ist der Ring von Leitbündeln. 2 Teil eines Halmquerschnittes vom Pfeifengras (Molinia coerulea). Sc Sklerenchymrippen, ScR Sklerenchymring als tangentialer Verband dazwischen. A Grünes Assimilationsgewebe. MH Markhöhle. Nach NOLL. 3 Zusammengesetzter Träger, stärker vergr. u. schematisiert. g′ g″ Gurtungen. f Füllung (in Form eines Leitbündels).
Die Biegungsfestigkeit wird nämlich bei sparsamer Verwendung von Festigungsmaterial am besten durch seine periphere Anordnung erreicht. Wenn man einen geraden Stab biegt, so wird die konvexe Seite notwendig verlängert, die konkave verkürzt. Wie die Fig. 110 zeigt, müssen dabei die äußersten Kanten a, a und a′, a′ des gebogenen Stabes am meisten beeinflußt: a′, a′ am stärksten gedehnt, a, a am stärksten zusammengedrückt werden, während die Längsstreifen i, i und i′, i′ im Innern sich nur wenig verlängern oder verkürzen. Wenn man also nicht den ganzen Stab aus fester Masse aufbauen, sondern mit dem Festigungsmaterial sparsam umgehen will, so wird man es möglichst an der Peripherie anbringen müssen; denn hier wird es einerseits Biegungen den größten Widerstand entgegensetzen, andererseits bei stärkeren Biegungen infolge seiner Festigkeit weniger leicht zerrissen oder zerquetscht werden als widerstandsloseres Material. Allbekannt ist ja, wie groß die Biegungsfestigkeit von Eisenröhren selbst mit ganz dünnen Wänden, sog. Mannesmannröhren, ist. Einen hohen Grad von Festigkeit erreicht der Techniker schon dadurch, daß er an der Peripherie biegungsfester Konstruktionen parallel zueinander und zur Längsachse des Gebildes einzelne Stäbe aus Festigungsmaterial, sog. Gurtungen, spannt. Von wesentlicher Bedeutung ist dabei, daß diese Gurtungen durch widerstandsfähige, gleichfalls elastische Füllungen (Fig. 111, 1) in ihrem wirksamen Abstande und in ihrem Verbande erhalten werden. Jeder Stab (Gurtung) bildet alsdann mit dem ihm auf der Gegenseite gegenüberliegenden einen Träger; das Material, das quer durch die Konstruktion hindurch zwischen den Stäben liegt, ist die Füllung dieses Trägers (Fig. 110). Wenn solche Füllungen fehlen, würde jeder Stab sich einzeln leicht biegen lassen. Sie können aber in hohlen Gebilden durch tangentialen Verband der Gurtungen, sei es durch Festigungsmaterial, sei es durch anderes ersetzt werden. Bei größeren biegungsfesten Konstruktionen ersetzt der Techniker die peripher gespannten Stäbe ihrerseits meist durch Träger, die wiederum aus zwei Gurtungen und einer Füllung bestehen (die Eisen-I-Träger der Technik).
Wie SCHWENDENER[51] zuerst gezeigt hat, sind die mechanischen Gewebe, die dem Pflanzenstengel Biegungsfestigkeit verleihen, etwa so angeordnet, wie es der Techniker tun würde, um sie mit wenig Aufwand von Festigungsmaterial widerstandsfähig zu machen. Bei vielen Gewächsen bildet das Festigungsgewebe einen peripheren Hohlzylinder, der direkt auf die Epidermis folgen oder tiefer ins Gewebe eingesenkt sein kann (Fig. 112 pc); bei anderen ein System entsprechend angeordneter, isoliert nebeneinander verlaufender Stränge (System der einfachen Träger Fig. 111, 1), die manchmal einem Hohlzylinder außen noch aufgesetzt sind (Fig. 111, 2); bei noch anderen ist jeder dieser peripheren Stränge selbst wieder in Form eines Trägers gestaltet (Fig. 111, 3), dessen Gurtungen alsdann allein aus mechanischem Gewebe bestehen, dessen Füllung aber meist aus einem Leitbündel gebildet wird (System der zusammengesetzten Träger). Monokotylenstengel sind im allgemeinen viel vollkommener biegungsfest gebaut als die Dikotylen- und Gymnospermenstengel in ihren primären Geweben; bei diesen wird die Festigkeit durch das sekundäre Dickenwachstum nachträglich noch erhöht. In grüngefärbten Stengeln, die an der Assimilationsarbeit beteiligt sind, liegen die mechanischen Gewebe entweder nicht direkt unter der Epidermis, so daß die Peripherie den lichtbedürftigen grünen Geweben überlassen bleibt, oder sie teilen sich an der Peripherie mit ihnen in den Raum (Fig. 111, 2).
Die innerste Zellschicht der Rinde pflegt in oberirdischen Stengelteilen von Landpflanzen, namentlich wenn sie völlig ausgewachsen sind, nicht besonders ausgebildet zu sein. In diesem Falle gibt es also keine scharfe Grenze zwischen Rinde und Zentralzylinder. Sie kann in ihnen aber auch als Stärkescheide, ferner namentlich in den Erdsprossen von Landpflanzen und in den Stengeln von Wasserpflanzen als typische Endodermis oder als eine Kutis ausgestaltet sein. Ist sie eine Stärkescheide (st Fig. 112 A und B), so zeichnen sich ihre Zellen durch den Gehalt an großen, leicht beweglichen Stärkekörnern aus.
Vielfach ist eine Stärkescheide nur in jungen Pflanzentrieben vorhanden, schwindet aber in älteren oder bleibt dort nur auf bestimmte Stellen beschränkt. Statt gemeinsamer Stärkescheiden oder Endodermen kann es auch solche um die einzelnen Leitbündel geben (Fig. 119 pp) oder an ihrer Stelle einzelne Zellreihen, die leicht bewegliche Stärkekörner enthalten.
Der Zentralzylinder besteht ebenfalls vor allem aus Parenchym, das seiner Lage entsprechend farblos oder nur schwach grün ist und hauptsächlich der Speicherung und Leitung von Stoffen dient; daneben kommt oft auch Sklerenchym in ihm vor. Seine wichtigsten Bestandteile aber sind die Leitbündel. Sie sind es, die die Blätter von den Wurzeln her mit Wasser und mit den notwendigen Nährsalzen aus dem Boden versorgen und umgekehrt organische Substanzen aus den Blättern zu dem Wurzelsystem schaffen. Die Bündel sind in das übrige Gewebe des Zentralzylinders eingebettet, wovon sie sich durch ihre engen Elemente und den Mangel an Interzellularen schon bei ganz schwacher Vergrößerung abheben. Sondert sich der Zentralzylinder gegen die Rinde durch eine Scheide scharf ab, so pflegen die Leitbündel nicht direkt an die Scheide anzugrenzen; den peripheren, ein- bis mehrschichtigen, leitbündelfreien Gewebemantel des Zylinders, der nicht selten aus Parenchym besteht (Fig. 112 A, B, pc), kann man als Perizykel bezeichnen.
Entweder ist nur ein zentrales Leitbündel im Stengel vorhanden, wie bei manchen Farnen und bei Lycopodium, oder es verlaufen im Stengel mehrere Leitbündel. In diesem Fall, der die Regel bildet, haben die Leitbündel einen bestimmten Verlauf und auf den Stengelquerschnitten infolgedessen eine eigenartige Anordnung. Auf den Querschnitten durch die Internodien sind sie nämlich im Zentralzylinder bei den Schachtelhalmen (Equiseten), den meisten Farnen, Gymnospermen und Dikotylen (Fig. 165) in einem Kreise angeordnet, dagegen bei den Monokotylen (Fig. 109) ohne Ordnung zerstreut. Bilden die Leitbündel einen Kreis, so gelten die von ihnen umschlossenen Gewebe des Zentralzylinders, die meist aus lebenden oder auch aus frühzeitig absterbenden Parenchymzellen bestehen, als Mark (Fig. 112 A, m), die die Bündel seitlich trennenden Gewebe als Markstrahlen (ms). Bei zerstreuter Verteilung der Bündel (Fig. 109) fehlt diese Sonderung.
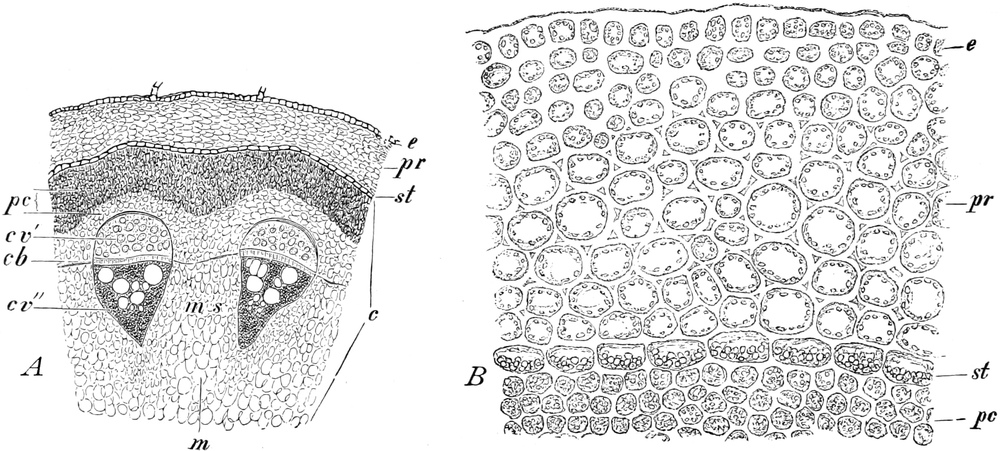
Fig. 112. A Teil eines Querschnittes durch einen jungen Stamm von Aristolochia Sipho. e Epidermis, pr Rinde, st Stärkescheide, c Zentralzylinder, pc Perizykel, in diesem Falle mit einem Ring von Sklerenchymfasern, cv Leitbündel, und zwar cv″ Gefäßteile, cv′ Siebteile, cb Kambiumring, m Mark, ms Markstrahl. Vergr. 48. B Kleiner Teil eines Querschnittes aus dem Umkreis eines noch jüngeren Stammteils. e Epidermis, pr Rinde, st Stärkescheide mit leicht beweglichen Stärkekörnern, pc äußere Zellschichten des Perizykels. Vergr. 350. Nach STRASBURGER.
Doch gibt es auch Farne (z. B. Pteris) und Dikotylen, bei denen die Leitbündel zwei (Cucurbita, Phytolacca, Piper) oder mehr Kreise (Amarantus, Papaver, Thalictrum) bilden. Die inneren Kreise pflegen wenig regelmäßig zu sein. Ferner gibt es in beiden Gruppen Gewächse, bei denen außer dem Bündelring und den Markbündeln noch kleine akzessorische Rindenbündel vorkommen.
Die Markstrahlen können aus Parenchym bestehen; nicht selten, z. B. bei vielen Kräutern, werden aber ihre inneren Teile, zwischen den Gefäßsträngen der Leitbündel, aus Sklerenchym gebildet, wogegen sich die äußeren parenchymatischen Teile zwischen den Siebsträngen der Bündel alsdann scharf absetzen.
Unterirdische Stengelteile (Erdsprosse) und submerse Wasserpflanzen, die zugfest gebaut sein müssen, haben die mechanischen Gewebe oft in ihrer Mitte, also im Marke.
Leitbündelverlauf. Ihren Funktionen entsprechend bilden die Leitbündel in den Pflanzen ununterbrochene Stränge, die sich, namentlich an Mazerationspräparaten, von den Wurzelspitzen bis in die Blattspitzen verfolgen lassen. Solche Präparate kann man aus krautartigen Pflanzenteilen gewinnen, die man in Wasser so lange liegen läßt, bis die Gewebe mit Ausnahme der resistenteren Leitbündel verfault sind.
Im Stengel ist der Verlauf besonders verwickelt. In die Basis der Sproßachse tritt das Leitbündel der Wurzel ein, das sich mit den Stengelbündeln vereinigt (vgl. S. 118). Die Stengelbündel können bis zur Stengelspitze verlaufen, ohne an ihrem Ende in Blätter überzugehen. Man nennt solche Leitbündel stammeigene Bündel. Umgekehrt sind blatteigene solche, die gleich nach ihrem Eintritte aus den Blättern in den Stengel mit stammeigenen Bündeln verschmelzen.
So bilden bei den Pteridophyten stammeigene Leitbündelstränge im Stengel ein netzartiges Bündelrohr oder auch ein einziges zentrales Leitbündel (Lycopodium u. a.), während die aus den Blättern kommenden blatteigenen Bündelstränge sich mit diesen stammeigenen Bündeln vereinigen.
Meist aber biegen die Bündel der Sproßachse an ihren Spitzen in die Blätter aus: gemeinsame Bündel, die also mit ihren unteren Teilen im Stengel, mit ihren oberen im Blatte verlaufen. In jedes Blatt kann ein oder können mehrere solche Bündel eintreten, die man in ihrer Gesamtheit als Blattspur bezeichnet. Es gibt also ein- und mehrsträngige Blattspuren. Bei den Samenpflanzen besteht das Leitbündelsystem des Stengels vor allem aus solchen Blattspuren.
In den Stengeln mancher Dikotylen (Begonien, Aralien) sind aber die innerhalb des Kreises der Blattspurstränge verlaufenden Kreise von Markbündeln stammeigene Bündel, die in den Knoten mit den Blattspursträngen durch Querzweige verbunden sind.
Die Blattspurbündel können im Stengel dauernd voneinander getrennt bleiben. Meist aber vereinigt sich jedes Bündel einer Blattspur bei seinem Abwärtsverlaufe schließlich mit einem anderen Bündel, das aus einem tiefer an der Achse befestigten Blatte stammt. Dieser Vereinigung kann eine Spaltung (Gabelung) des Bündels vorausgehen. Durch einen solchen netzartigen Verlauf der Bündel wird eine gleichmäßige Versorgung der Pflanze mit Wasser erreicht, da ein jedes Bündel des Stengels infolge seiner Verzweigungen größeren Sproßabschnitten Wasser liefert. Je nach der Länge des Weges, den die einzelnen Bündel im Stengel frei zurücklegen, der Richtung, die sie verfolgen, und der Spaltung, die sie unter Umständen erfahren, ist das Bild des Bündelverlaufes bei den verschiedenen Arten ein anderes. Natürlich ist die Blattstellung für die Eintrittsstellen der Blattspuren in den Stengel bestimmend; der Verlauf im Stengel ist aber von der Blattstellung ganz unabhängig, so daß er bei ein und derselben Blattstellung ganz verschieden sein kann.
Bei den Schachtelhalmen, den Koniferen und den Dikotylen dringen alle Blattspurstränge gleich tief in den Stengel ein, um im Stengel auch gleich weit von der Stengelmitte, also auf dem Querschnitt zu dem charakteristischen Kreise geordnet, nach abwärts zu laufen. Infolgedessen kann man den Bündelverlauf in den Internodien auf einer Zylinderfläche darstellen, die sich in eine Ebene ausbreiten läßt. In den Knoten freilich ist der Bündelverlauf meist viel verwickelter, weil hier die Blattspurstränge noch durch stammeigene Querverbindungen miteinander verbunden sind. Nachträgliche seitliche Verbindungen findet man übrigens oft auch in den Internodien.
Ein relativ einfaches Beispiel eines Bündelverlaufs liegt in den jungen Zweigen von Juniperus nana vor (Fig. 113). Ihre Blätter stehen in dreigliedrigen Quirlen. Aus jedem Blatt tritt eine einsträngige Blattspur, somit ein einziges Bündel in den Stengel ein. Etwa in der Mitte des nächst unteren Internodiums gabelt es sich in zwei Schenkel, die je rechts und links mit benachbarten Blattspuren verschmelzen. Weniger einfach erscheint das Bild des in Fig. 114 dargestellten Bündelverlaufs in einem jungen Zweige von Taxus baccata, obwohl auch hier die Blattspuren einsträngig sind. Jede Blattspur läßt sich frei durch 12 Stengelglieder abwärts verfolgen, worauf sie mit einer anderen verschmilzt. Zunächst läuft sie durch vier Internodien gerade abwärts, dann biegt sie seitlich aus, um einer eintretenden Spur Platz zu machen und sich mit ihr zu vereinigen. Bei Taxus stehen die Blätter nach 5⁄13; dementsprechend zeigen auch die Eintrittsstellen der Blattspuren in den Stengel 5⁄13 Divergenz. Ein Beispiel dreisträngiger Blattspuren sei aus einem jungen Zweige der italienischen Waldrebe (Clematis Viticella) vorgeführt. Die Blattpaare an diesen Zweigen stehen dekussiert. Die Medianstränge der Blattspuren (a u. d, g u. k, n u. q, t u. x Fig. 115) laufen durch ein Internodium abwärts, teilen sich im nächsten Knoten in zwei Schenkel und fügen diese den ihnen zugekehrten Lateralsträngen der Blattspuren des dortigen Blattpaares an. Die zwei Lateralstränge jeder Blattspur (b u. c, e u. f, h u. i, l u. m, o u. p, r u. s) lassen sich ebenfalls durch ein Internodium frei abwärts verfolgen, biegen im nächsten Knoten zusammenneigend nach außen und legen sich den nämlichen Lateralsträngen wie die Schenkel des Medianstranges an.
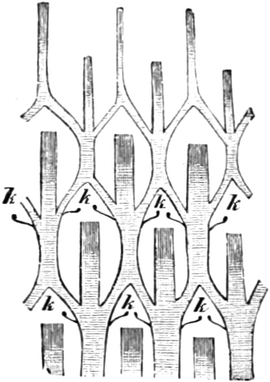
Fig. 113. Schematische Darstellung des Leitbündelverlaufs in einem jungen Zweige von Juniperus nana, auf der eben gelegten Zylinderfläche entworfen. Bei k, k die in die Achselsprosse tretenden Bündel. Nach GEYLER.
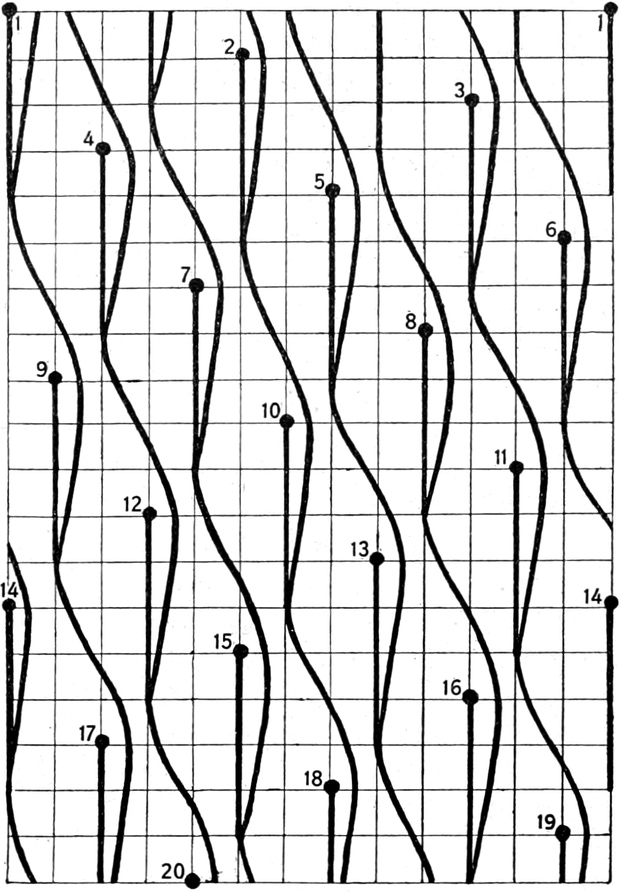
Fig. 114. Schematische Darstellung des Bündelverlaufs in einem jungen Zweige von Taxus baccata. Das Bündelrohr ist einseitig bei 1 längs aufgeschlitzt und in einer Ebene ausgebreitet.
Einem ganz anderen Typus folgt der Bündelverlauf bei den Monokotylen (Fig. 116). Hier befinden sich die einzelnen Blattspurstränge im Zentralzylinder ungleich weit von der Oberfläche des Stengels entfernt, sind also auf dem Stengelquerschnitte zerstreut. Diese Anordnung kommt dadurch zustande, daß das Dickenwachstum des Stengelvegetationspunktes nach Anlage der ersten medianen Bündel des Blattes noch längere Zeit anhält. Infolgedessen gelangen die später, und zwar nacheinander erzeugten Bündel der Blattflächen nicht so weit, und zwar verschieden tief nach innen. Besonders ausgeprägt kommt diese Anordnung bei den Palmen (Palmentypus) vor. Jede Blattspur besteht hier aus zahlreichen Strängen, die aus einem stengelumfassenden Blattgrund im ganzen Umkreise in den Stengel eintreten. Die in dem Blattgrund medianen Leitbündel (vgl. das Bild des medianen Längsschnittes durch den Stengel Fig. 116, in das für ein jedes Blatt A, B, C nur das mediane und ein seitliches Leitbündel eingezeichnet ist) dringen fast bis zur Mitte, die seitlich angrenzenden (a, b, c) immer weniger tief in den Zentralzylinder ein. In ihrem Abwärtsverlaufe nähern sich die Bündel langsam der Peripherie des Zentralzylinders, wo sie mit anderen verschmelzen. Die Zahl der Internodien, die jedes durchläuft, ist verschieden, für die medianen besonders groß.
Leitbündelbau[68]. Die Stengelbündel sind Gewebestränge von kreisrundem, breit- oder schmalelliptischem Querschnitte, und zwar sind es fast stets vollständige Leitbündel, d. h. solche Bündel, worin Sieb- und Gefäßstränge zu gemeinsamen Strängen verbunden sind (vgl. S. 58). Die Siebstränge, deren wichtigster Bestandteil die Siebröhren sind, bilden das Phloëm (den Siebteil), die Gefäßstränge mit den wasserleitenden Gefäßen das Xylem (den Gefäßteil) des Bündels. Die Stengelbündel können bei den einzelnen Kormophyten recht verschieden gebaut sein. In den Sproßachsen findet man alle die verschiedenen Bündeltypen, die sich in den Organen der Kormophyten überhaupt unterscheiden lassen, nämlich radiale, konzentrische und kollaterale Bündel. Diese Leitbündelformen unterscheiden sich voneinander durch die Anordnung und die Ausbildung ihrer Sieb- und Gefäßstränge.
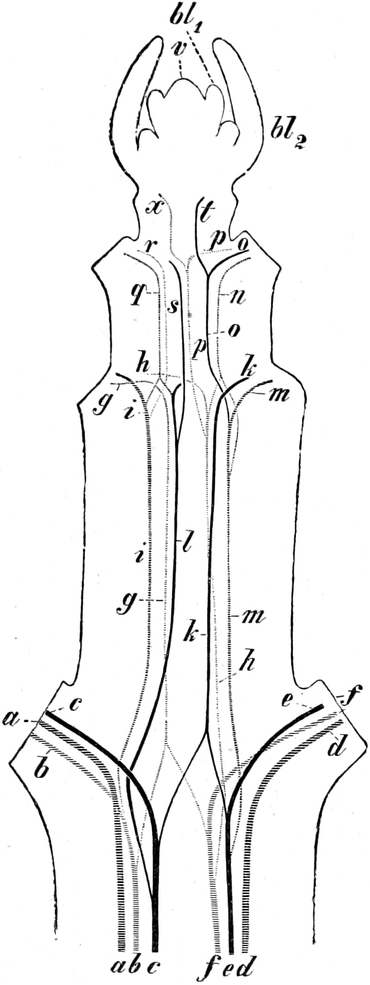
Fig. 115. Clematis Viticella. Zweigende durch Entfernung der Oberfläche und Einwirkung von Kalilauge durchsichtig gemacht, den Verlauf der Blattspuren zeigend. Die austretenden Enden der Stränge infolge leichten Druckes etwas verschoben. Die jungen Anlagen der beiden obersten Blattpaare bl1 und bl2 noch ohne Blattspuren, v Vegetationskegel. Nach NÄGELI.
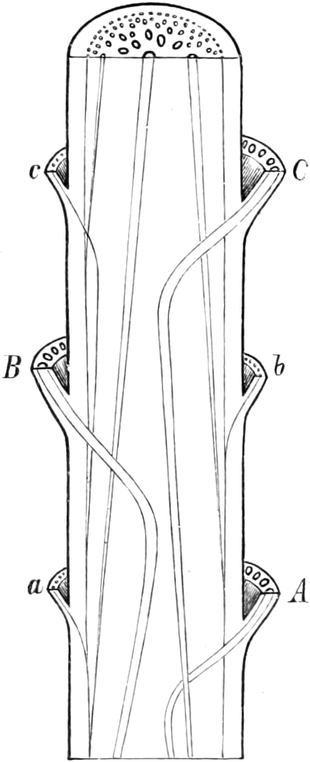
Fig. 116. Schematische Darstellung des Bündelverlaufs nach dem Palmentypus, innerhalb eines medianen Längsschnittes durch den Stengel in der Ebene der Blattmedianen. Zweizeilig alternierende, stengelumfassende Blätter sind vorausgesetzt. Die Blätter Aa, Bb, Cc sind nahe ihrer Basis abgeschnitten; die großen Buchstaben bezeichnen ihre Medianen. Oben der Stengel im Querschnitt. ROTHERT frei nach ROSTAFINSKI.
Im radialen Leitbündel (Fig. 117, vgl. auch Fig. 158, 160) gibt es mehrere Gefäß- und Siebstränge, die auf dem meist kreisrunden Bündelquerschnitt wie die Radien eines Kreises neben- und miteinander abwechselnd angeordnet sind und in Seitenansicht parallel zur Längsachse des Pflanzenteils verlaufen. Stoßen die Gefäßstränge im Zentrum des Leitbündels zusammen, so bilden sie eine sternförmige Querschnittsfigur; die Enden der Zacken werden von den engsten Gefäßen (den Gefäß- oder Xylemprimanen, vgl. dazu S. 90) eingenommen, während die Gefäße nach dem Zentrum des Bündels hin immer weiter werden (Fig. 117). In den Buchten zwischen den Zacken liegen die Siebstränge und in ihnen außen die engsten Siebröhren (die Sieb- oder Phloëmprimanen). Radiale Bündel, die für die Wurzeln bezeichnend sind, kommen in Sprossen freilich nur selten, und zwar stets in Einzahl, vor, z. B. in manchen Lycopodienstengeln.
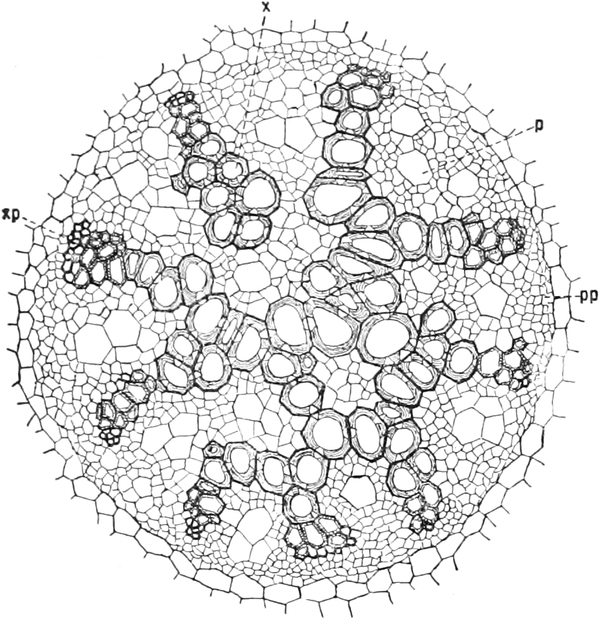
Fig. 117. Radiales Leitbündel aus dem Stengel von Lycopodium Hippuris, p Phloëm, pp Phloëmprimanen, x Xylem, xp Xylemprimanen. Vergr. 30.
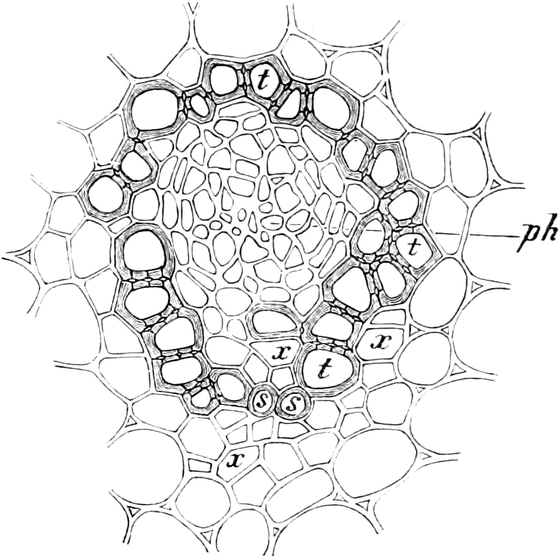
Fig. 118. Konzentrisches Leitbündel mit Außenxylem aus dem Wurzelstock von Convallaria majalis. ph Phloëm, x, t Xylem, s Xylemprimanen. Nach ROTHERT.
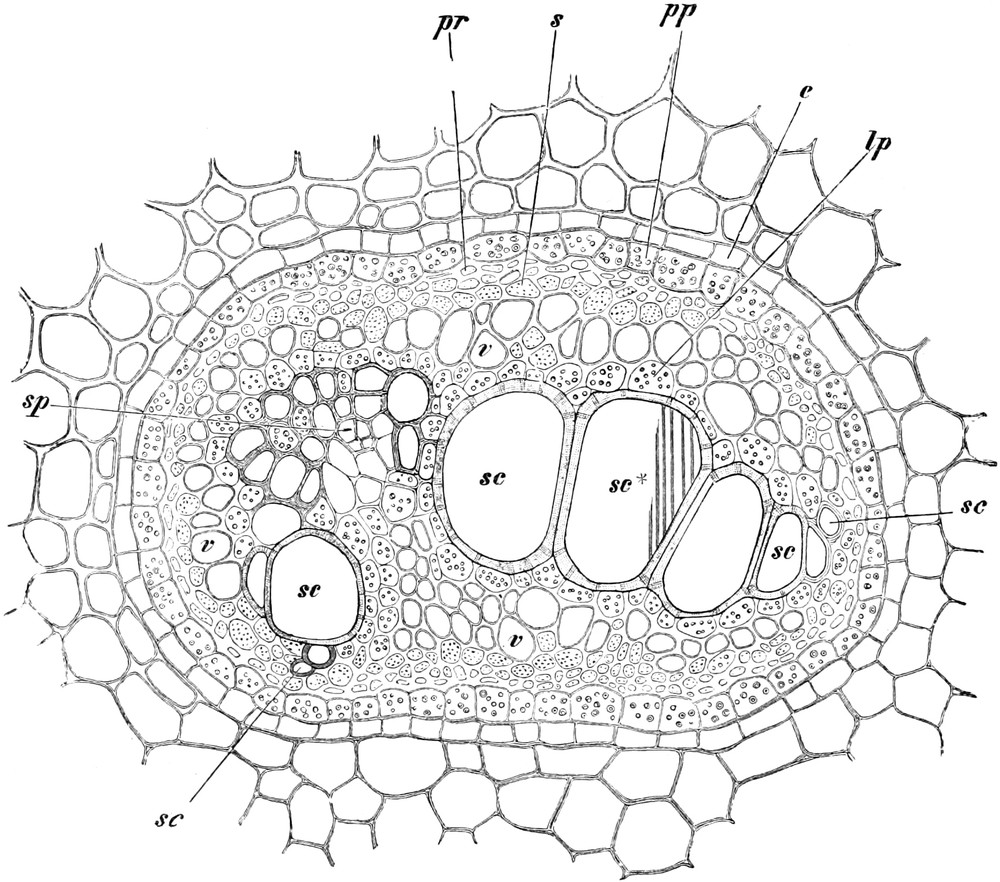
Fig. 119 Querschnitt durch ein konzentrisches Leitbündel aus dem Blattstiel des Adlerfarns (Pteridium aquilinum). sc Treppentracheïden, sp Xylemprimanen (Schraubentracheïden); in der Treppentracheïde sc* Stück einer leiterförmig verdickten schrägen Endwand, lp Xylemparenchym, v Siebröhren, s Phloëmparenchym, pr Phloëmprimanen, pp Stärkeschicht, e Endodermis. Vergr. 240. Nach STRASBURGER.
Im konzentrischen Bündel wird ein zentraler Gefäß- oder Siebstrang allseits von einem hohlmantelförmigen Sieb- oder Gefäßstrang konzentrisch umgeben. Liegt das Xylem zentral, so kann man das Bündel als konzentrisch mit Innenxylem, liegt es dagegen außen, als ein solches mit Außenxylem bezeichnen. Konzentrisch mit Innenxylem sind die Bündel bei den meisten Farnen (Fig. 119) und bei bestimmten Dikotylen das Stengelbündel (viele Holzpflanzen). Konzentrisch mit Außenxylem sind sie z. B. in gewissen Erdsprossen und Stämmen von Monokotylen (Fig. 118); solchen Bau haben ferner die markständigen Bündel z. B. bei Piperaceen, Begonia, Campanula u. a.
Bei den Pteridophyten liegen die engsten Gefäße (die Gefäßprimanen) (sp) in dem Xylemstrang entweder gruppenweise peripher oder zentral oder zwischen den älteren Gefäßen. Die Gefäßstränge werden von einer Parenchymschicht (lp) umhüllt. Daran schließt im Umkreis der aus Siebröhren (v) und aus Parenchym (s) bestehende Mantel, an dessen Außenrand die engsten Siebröhren (die Siebprimanen) gelegen sind.
Im kollateralen Leitbündel endlich (Fig. 120 A), das auch nur einen Gefäßstrang und meist nur einen Siebstrang enthält, liegt der Gefäßteil neben oder besser hinter dem Siebteil, so daß Xylem und Phloëm sich nur einseitig berühren. Die Medianebenen solcher Bündel sind in den Stengeln immer radiär gerichtet, so daß diese Bündel im allgemeinen ihre Gefäßteile nach innen, ihre Siebteile nach außen kehren. Die engsten Gefäße (die Xylemprimanen) liegen im kollateralen Bündel gewöhnlich am Innenrande des Gefäßteiles (bezogen auf den Stengelquerschnitt), die Phloëmprimanen am Außenrande des Siebteiles. Solche kollaterale Leitbündel sind den Sprossen der Samenpflanzen und der Schachtelhalme eigentümlich. Doch kommen auch bikollaterale Leitbündel vor, die nicht nur außen, sondern auch innen einen Siebstrang besitzen, so in den Stengeln der kürbisartigen Gewächse (Cucurbitaceen). Die kollateralen Bündel sind bei den Monokotylen, wie die radialen und die konzentrischen Leitbündel, meist geschlossen, d. h. das ganze Bündel besteht aus Dauergewebe, und der Gefäßteil grenzt unmittelbar an den Siebteil (Fig. 120 A). Bei den Gymnospermen und Dikotylen sind sie dagegen meist offen, d. h. die Sieb- und die Gefäßteile bleiben dauernd durch eine Schicht meristematisches Gewebe, das Kambium der Bündel, getrennt (Fig. 121).
Bei sämtlichen Leitbündelformen bestehen die Gefäßstränge vor allem aus engen oder weiten, verholzten Elementen, die der Wasserleitung dienen: Tracheïden und Tracheen (Fig. 120 a, sp, m; Fig. 122 rp, sp, s, n, t) oder Tracheïden allein, die sämtlich einzeln für sich oder zu Gruppen ohne Interzellularen zwischen lebende, enge, langgestreckte und oft unverholzte Leitparenchymzellen, Xylemparenchym, eingebettet oder von ihnen in Form einer lückenlosen Scheide umgeben werden (Fig. 119 lp). Auch Sklerenchymfasern sind manchmal in den Gefäßsträngen vorhanden. Bei den Farnpflanzen sind sämtliche Gefäße ausschließlich als Tracheïden ausgebildet; in den Bündeln der Samenpflanzen kommen dagegen meist Tracheïden und Tracheen nebeneinander vor. In allen Bündeln (vgl. Fig. 122) sind die engsten Gefäße Ring- und Schraubengefäße, die übrigen aber meist Netz- und Tüpfelgefäße, bei den Pteridophyten, abgesehen von den Primanen, nur Treppengefäße (Fig. 70 A).
In den Siebsträngen der Leitbündel (Fig. 119 und 120) verlaufen die der Eiweißleitung dienenden Siebröhren (v). Sie sind stets von anderen lebenden Zellen begleitet, entweder nur von Geleitzellen (Fig. 120 s), die meist kürzer als die Siebröhrenglieder und mit diesen durch Siebplatten verbunden sind, oder von Geleitzellen und von anderen gestreckten Parenchymzellen (Phloëmparenchym) oder von letzteren allein (Fig. 119 s). Ist Phloëmparenchym vorhanden, so sind die Siebröhren einzeln oder gruppenweise lückenlos darin eingebettet.
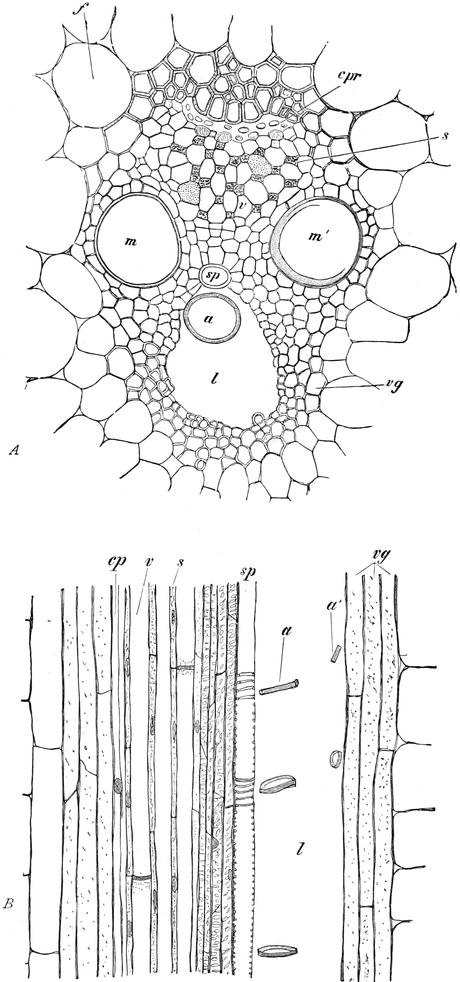
Fig. 120. A Querschnitt, B Längsschnitt durch ein geschlossenes, kollaterales Leitbündel aus dem Stengel von Zea mays. a Ring einer Ringtracheïde, sp Schraubentracheïde, m und m′ Tüpfeltracheen, v Siebröhre, s Geleitzelle. cpr und cp zerdrückte Phloëmprimanen, l Gefäßgang, vg Scheide. Vergr. 180. Nach STRASBURGER.
Geleitzellen kommen nur den Siebröhren der Angiospermen zu. Sie sind Schwesterzellen der Siebröhrenglieder, gehen mit ihnen durch Längsteilung aus derselben Mutterzelle hervor, erfahren aber meist noch Querteilungen. Ihre Weite ist geringer als die der Siebröhrenglieder, sie zeichnen sich vor letzteren auch durch ihren reichlichen plasmatischen Inhalt aus. In einzelnen Fällen findet man im Phloëm auch Milchsaft- oder Schleimröhren.
Das vollständige Bündel ist seinerseits gewöhnlich noch von einer Bündelscheide mehr oder weniger umschlossen, die aus interzellularenfreiem Parenchym (oft reich an großen Stärkekörnern: Stärkescheide), aus Sklerenchym oder aus einer Schicht von Endodermiszellen (manchmal auch aus Kutisgewebe) bestehen kann. Sie wird nicht zum Leitbündel gerechnet. Die Scheiden dienen wohl vielfach dazu, die Stoffleitung auf die Bündel zu begrenzen. Scheiden aus Sklerenchym sind besonders häufig den Außenseiten der Siebteile als halbmondförmige Sklerenchymschicht (Fig. 120 A, 121 vg) vorgelagert und bei zerstreuter Bündelanordnung namentlich an den äußeren Leitbündeln ausgebildet.
Wo eine sklerenchymatische Scheide ein kollaterales Bündel umgibt, ist sie oft an jeder Seite des Bündels, an der Grenze von Gefäß- und Siebteil, durch parenchymatische oder schwächer verdickte und schwächer verholzte Elemente unterbrochen. Diese Stellen erleichtern den Austausch von Wasser und Nahrungsstoffen zwischen dem Bündel und dem Parenchym; sie werden als Durchlaßstreifen bezeichnet.
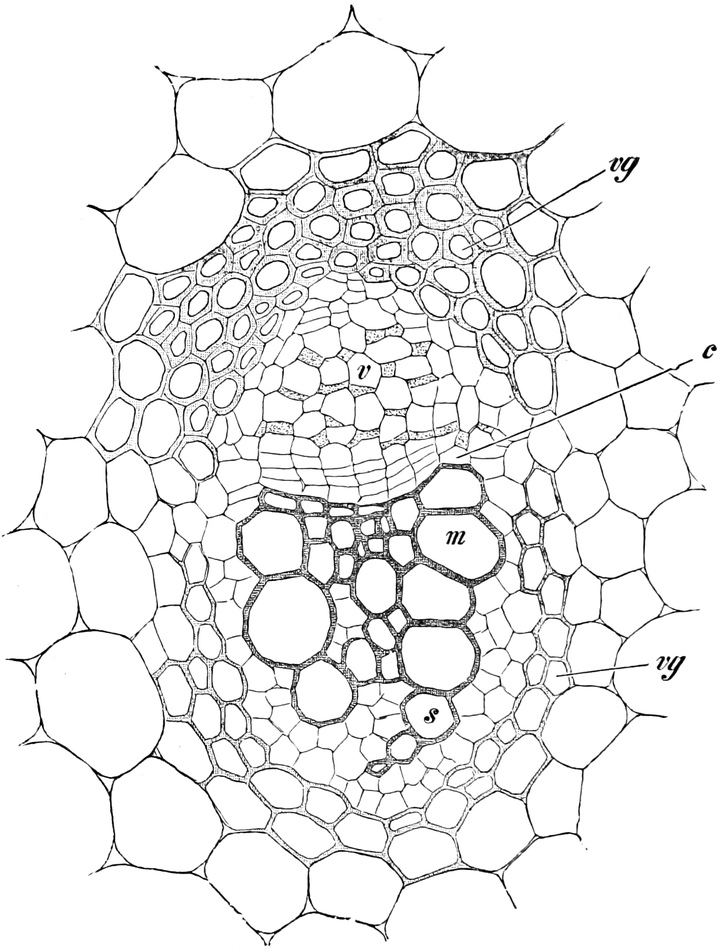
Fig. 121. Querschnitt durch das offene, kollaterale Leitbündel eines Ausläufers von Ranunculus repens. s Schraubentracheïden, m Tüpfeltracheen, c Kambium, v Siebröhren, vg Scheide. Vergr. 180. Nach STRASBURGER.
Um den Bau der Bündel und die Unterschiede zwischen den Leitbündeltypen vollständig zu verstehen, ist auch noch ein Einblick in ihre ontogenetische Entwicklung erforderlich. Die primären Leitbündel gehen aus Strängen langgestreckter Urmeristemzellen hervor. In ihnen vollzieht sich die Gewebesonderung nur allmählich, und zwar ungleichzeitig in den Zellen eines Stranges. Solange nämlich ein Pflanzenteil noch stark in die Länge wächst, bleiben die Stränge der Hauptmasse nach undifferenziert. Nur an engbegrenzten Stellen, die meist an den Rändern jedes Stranges gelegen sind, wandeln sich einzelne Zellenzüge in Dauergewebe um, und zwar auf Streckung oder Dehnung eingerichtete Elemente: ring- und schraubenförmig verdickte Tracheïden einerseits, Siebröhren oder Siebröhren nebst Geleitzellen andererseits. Diese Tracheïden werden deshalb als Erstlinge des Gefäßteils, Xylemprimanen (Protoxylem), die Siebröhren als Erstlinge des Siebteils, Phloëmprimanen (Protophloëm), bezeichnet. Erst nach vollendetem Längenwachstum des Pflanzenteils werden die Leitbündel fertiggestellt, wobei die Differenzierung der meristematischen Gewebe von den Primanen aus fortschreitet und im Gefäßteil nacheinander zuerst Ring-, dann Schrauben-, Netz-, schließlich Tüpfelgefäße ausgebildet werden (Fig. 120 B, 122). Die Xylemprimanen sind im fertigen Leitbündel vielfach zerdrückt, auch wohl durch Dehnung zerrissen (a und a′ Fig. 120 B, l; rp Fig. 122); in manchen Fällen ist ein lysigener, von Wasser erfüllter Interzellulargang („Gefäßgang“) an ihrer Stelle ausgebildet (Fig. 120 l), der aber noch der Wasserleitung dient[69]. Die Wände der Phloëmprimanen (Fig. 120 B, cp) sind im fertigen Bündel verquollen, ihre Siebplatten durch Kallusbeläge verschlossen.
Beim radialen Bündel schreitet die Ausbildung der Elemente entsprechend der Lage der Primanen in den Gefäß- und Siebsträngen von der Peripherie des Bündels nach dem Zentrum fort, beim kollateralen Bündel dagegen im Siebteil vom Außenrande, im Gefäßteile aber vom Innenrande des Bündels gegen die Mitte des Bündels; wird dabei alles Meristem aufgebraucht, so entsteht ein geschlossenes kollaterales Bündel, bleibt etwas davon erhalten, ein offenes. In den konzentrischen Bündeln vollzieht sich die Ausbildung des Phloëms und Xylems nicht nach einem einheitlichen Typus; dementsprechend ist die Lage der Primanen verschieden.
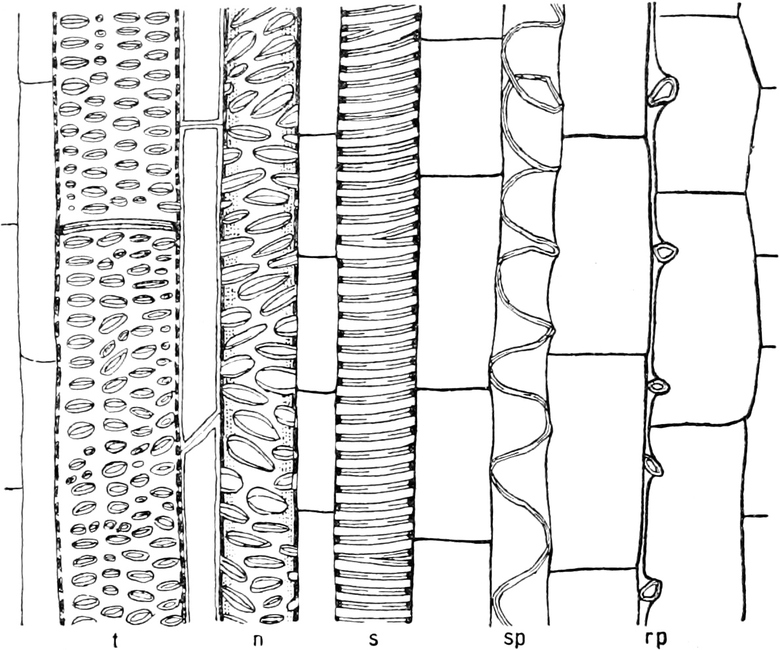
Fig. 122. Längsschnitt durch den Gefäßteil des kollateralen Leitbündels von Impatiens parviflora. rp Durch Längenwachstum des Stengels weit auseinander gerückte Ringverdickungen einer stark gedehnten Ringprimane; sp gedehnte Schraubenprimane; s Schrauben-, n Netz-, t Tüpfelgefäß. s, n, t erst nach Beendigung des Streckungswachstums ausgebildet. Vergr. 120.
Bündel, in denen man das Protoxylem am Innenrande des Xylems (wie bei den kollateralen und den konzentrischen Bündeln der Monokotylen) oder im Zentrum des Xylems (wie oft bei konzentrischen) findet, nennt man auch wohl endarch. Die Xylemprimanen können aber auch an anderer Stelle ausgebildet sein, z. B. am Außenrande des Xylems, exarch, wie beim radialen Bündel; oder in einer oder in mehreren Gruppen mesarch, d. h. zwischen Außen- und Innenrand des Gefäßteiles, z. B. in den Blattstielen der Cycadeen und im konzentrischen Bündel vieler Farne zwischen Peripherie und Zentrum des Xylems, also zwischen weitere Gefäße eingebettet.
Ob irgendwelche Beziehungen zwischen der Anordnung der Sieb- und Gefäßteile und den Leitungsbedürfnissen der Pflanzenteile bestehen, darüber wissen wir noch gar nichts[67],[68].
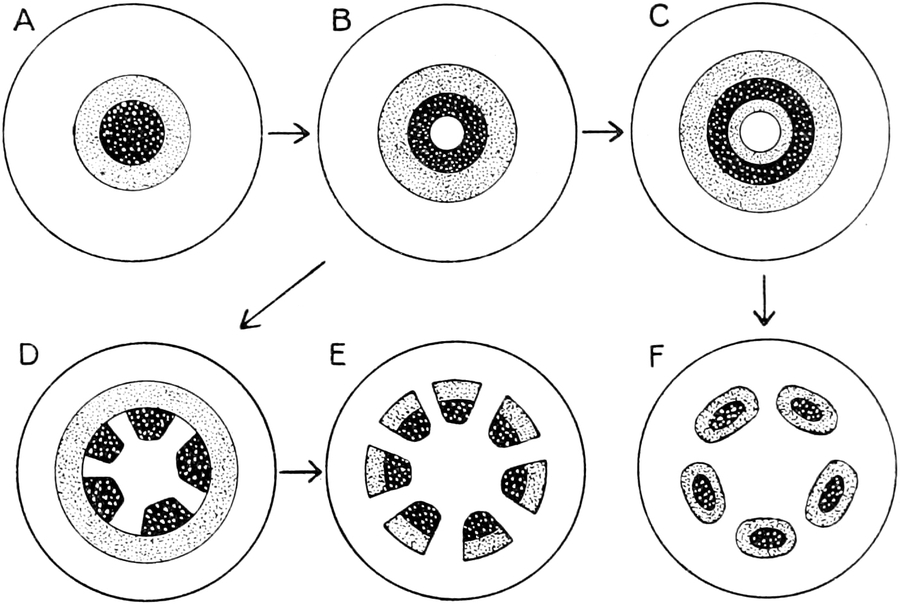
Fig. 123. Phylogenie der Leitbündeltypen, schematisch. Weiß: Rinde und Mark, schwarz punktiert: Phloëm, weiß punktiert auf schwarz: Xylem. Erklärung im Text.
Ebensowenig sehen wir über die Phylogenie der Bündeltypen klar. Allen Grund haben wir freilich zu der Annahme, daß ein Stengel mit einem einzigen zentralen Leitbündel als primitiv anzusehen ist. Ein solches finden wir in den Stengelteilen mancher lebender und ausgestorbener Farnpflanzen und in sämtlichen Wurzeln. Zu den einfachsten und phylogenetisch ältesten Leitbündeln dürfte das konzentrische Bündel mit einem soliden zentralen Xylemstrange gehören; wenigstens ist ein solches, wie es scheint, in den Keimsprossen fast aller lebenden Farne vorhanden (vgl. Fig. 123 A). Aber auch das radiale Bündel dürfte phylogenetisch sehr alt sein. Dafür spricht, daß es allen Wurzeln lebender und fossiler Kormophyten, soweit wir wissen, zukommt und daß es außerdem auch in den Stengeln einiger Kormophyten ausgebildet ist, während kein anderer Bündeltypus in Stengeln und Wurzeln sich findet. Die Vielförmigkeit, die man im Bau und in der Anordnung der Sproßbündel bei den Farnpflanzen im Gegensatz zu den Samenpflanzen findet, erlaubt auch Vermutungen darüber, wie aus einem Stengel mit einem konzentrischen Bündel Stengel mit anderem Bau entstanden sein können. Einmal nämlich finden wir Formen (Fig. 123 B), bei denen der Gefäßteil des einzigen zentralen Bündels zu einem Hohlzylinder mit zentralem Strang von Parenchym („Mark“) geworden ist (Gleicheniaceen, Schizaeaceen), weiter solche (Fig. 123 C), wo auf den Xylemhohlzylinder noch ein innerer Phloëmmantel und dann erst ein Mark folgt (z. B. Marsilia); endlich solche (Fig. 123 F), bei denen dieses Bündelrohr von rhombischen Lücken, den Blattlücken (d. h. den Ausgangsstellen der Blattbündel), zu einem netzartigen Maschenwerk durchbrochen ist (z. B. Aspidium Filix mas). In diesem Falle findet man auf dem Stengelquerschnitte einen Kranz von zahlreichen, übrigens typisch gebauten konzentrischen Bündeln, jedes mit einem soliden, zentralen Xylemstrange. Ferner kommen aber auch Formen vor (Fig. 123 D), bei denen in dem zentralen, konzentrischen, markhaltigen Bündel der an das Mark anschließende Xylemhohlzylinder in eine Anzahl nebeneinander liegender, längs verlaufender Xylemstränge aufgelöst ist, die durch radiale Parenchymplatten voneinander getrennt und von einem geschlossenen Phloëmaußenmantel umhüllt werden (z. B. Osmunda). Und schließlich gibt es Formen (Fig. 123 E), bei denen auch dieser Phloëmmantel noch in entsprechende Stränge zerlegt ist, so daß die radialen Parenchymplatten als „Markstrahlen“ die nunmehr kollateralen Xylem-Phloëmstränge völlig voneinander trennen (Rhizom von Ophioglossum). Diese Reihen zeigen uns, wie aus einem zentralen konzentrischen Bündel durch Zerteilung erstens ein netzartiges Bündelrohr, das im Querschnitt aus vielen konzentrischen, kreisförmig angeordneten Bündeln besteht, zweitens ein Hohlrohr aus kollateralen Bündeln entstehen kann. Nimmt man an, daß die phylogenetische Entwicklung sich in dieser Weise vollzogen hat, so würde also nicht ein kollaterales Bündel der Samenpflanzen oder eines der vielen konzentrischen Bündel, die man auf den Stengelquerschnitten vieler Farne findet, dem einen zentralen konzentrischen Bündel „primitiv gebauter“ Farnpflanzen homolog sein, sondern die Gesamtheit aller kollateralen oder konzentrischen Bündel im Stengel, d. h. also der Zentralzylinder wäre homolog zu setzen dem einen zentralen konzentrischen oder radialen Leitbündel. Bezeichnet man nach dieser Auffassung, der Stelärtheorie[70], das radiale Bündel oder das einzige zentral gelegene konzentrische Bündel als Stele, so hätte die Gesamtheit der konzentrischen oder kollateralen Bündel, die zu einem Bündelrohr verbunden sind, samt dem umschlossenen Mark ebenfalls als Stele zu gelten, da sie ja aus der Urstele entstanden gedacht ist. Danach kann also ein „Einzelbündel“ eine ganze Stele oder nur ein Teil einer solchen sein. Die Stele (der Zentralzylinder) der Samenpflanzen liegt gewöhnlich als zentraler Gewebestrang im Stengel (Monostelie). Doch kommen auch Fälle vor, wo er in mehrere Teilzylinder zerlegt ist (Polystelie), so in den Stengeln der Aurikeln und von Gunnera.
γ) Die Blätter[71]. 1. Anlage der Blätter. Wir sahen die Blattanlagen am Vegetationspunkte des Sprosses exogen als seitliche Höcker oder Wülste auftreten (Fig. 98, 102 f), die zunächst ungegliedert sind. Man kann sie als Blattprimordien bezeichnen (Fig. 127 A, b). Gewöhnlich nimmt eine Blattanlage nur einen Teil des Vegetationspunktumfanges ein; doch kommt es auch vor, daß sie als ringförmiger Wall den ganzen Vegetationspunkt umfaßt. Auch die Anlagen mehrerer quirlständiger Blätter können zunächst als einziger ringförmiger Wall auftreten und sich erst weiterhin sondern; entstehen sie sogleich als selbständige Anlagen, so bilden sich diese entweder gleichzeitig oder in der Regel[65], [114] nacheinander aus.
In freilich seltenen Fällen kann ein Blatt auch terminal am Vegetationspunkte entstehen.
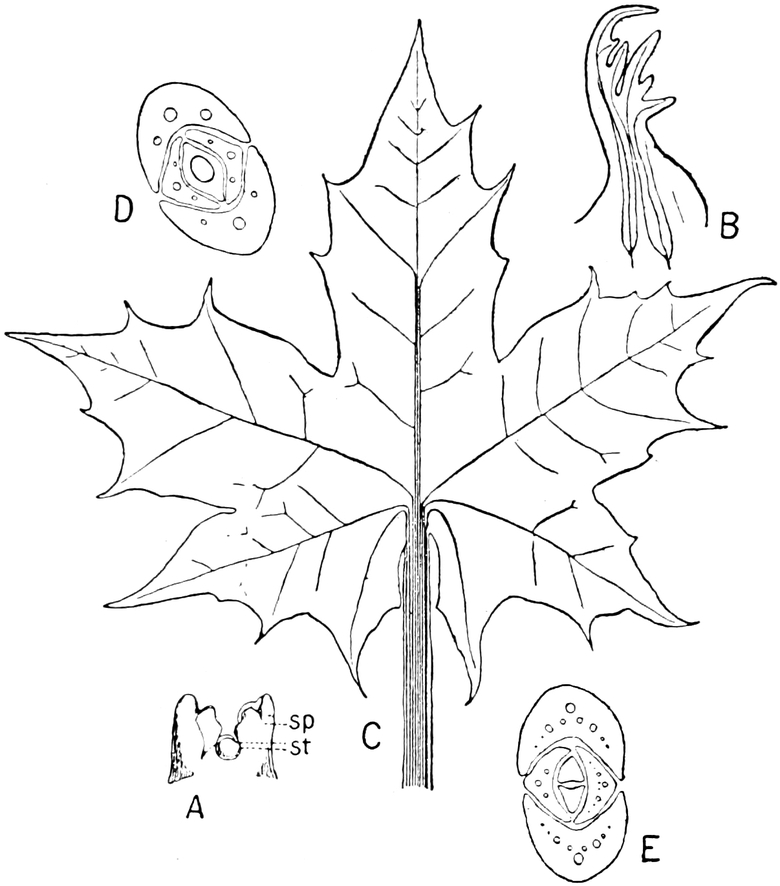
Fig. 124. Ahorn (Acer platanoides). A Außenansicht einer Knospe mit zwei Blattanlagen, zwischen denen der Vegetationskegel des Sprosses zu sehen ist. In sp die Blattspreite, an der fünf Abschnitte angelegt sind, von denen der oberste Abschnitt zuerst ausgebildet wurde. In st die Zone, durch deren Wachstum der Blattstiel später entstehen soll. B Älteres Blatt von der Seite, die Stränge in seinem Innern stellen die Leitbündelanlagen vor, die später äußerlich die Nervatur bestimmen sollen. C Ausgewachsenes Blatt mit schematischer Darstellung des Leitbündelverlaufs. D Querschnitt durch den basalen Teil einer Knospe, mit je drei Bündelanlagen in jedem Blatt. E höher geführter Querschnitt durch eine Knospe, die Zahl der Bündelanlagen durch Verzweigung innerhalb der Blätter vermehrt. A, B und E schwach vergrößert. Nach DEINEGA aus Goebels Organographie.
Während der Sproß im allgemeinen mittels seines Vegetationspunktes unbegrenzt, und zwar an der Spitze weiterwächst, ist das Wachstum der Blattanlagen, die meist nur kurze Zeit an ihrer Spitze wachsen, in der Regel begrenzt. Ausgesprochenes und langdauerndes Scheitelwachstum zeichnet dagegen z. B. die Blätter der Farne aus. Ist das Wachstum begrenzt, so wird die Spitze, die in ihrer Entwicklung dem übrigen Blatte voranzueilen pflegt, zuerst in Dauergewebe umgewandelt. Das geschieht zum Schutze der jüngsten Knospenteile, den die Blätter zunächst zu übernehmen haben, wie wir schon sahen. Das weitere Wachstum des Blattes vollzieht sich in der Regel durch Streckung interkalar, und zwar meist so, daß von der Spitze nach der Basis fortschreitend das Blattmeristem in Dauergewebe übergeht, das Wachstum also am längsten und stärksten in der Blattbasis bis zur fertigen Ausgestaltung des Blattes fortdauert.
Besonders auffällig ist das Vorauseilen in der Ausbildung der Blattspitzen bei verschiedenen tropischen Gewächsen, besonders Kletterpflanzen. Dort fällt diesen Blattspitzen nach M. RACIBORSKI, der sie Vorläuferspitzen nennt, die Aufgabe zu, vor der Fertigstellung des Blattes schon die Funktionen der Blattspreite zu übernehmen.
Sehr eigenartig und abweichend von allen anderen Kormophyten verhält sich Welwitschia mirabilis. Sie bildet über den Keimblättern nur ein einziges Paar von Laubblättern, deren basale Zonen in jährlicher Periode einen Zuwachs erfahren, während die Blattenden allmählich verwittern.
2. Verschiedene Ausgestaltung der Blätter. Die Blätter des Sprosses haben sehr verschiedene Funktionen und werden dementsprechend an einem und demselben Stengel ganz verschieden ausgebildet, obwohl sie alle der Anlage nach gleich angelegt sind. Den Wechsel in der Ausbildung aufeinanderfolgender Blätter am Stengel bezeichnet man als seine Blattfolge.
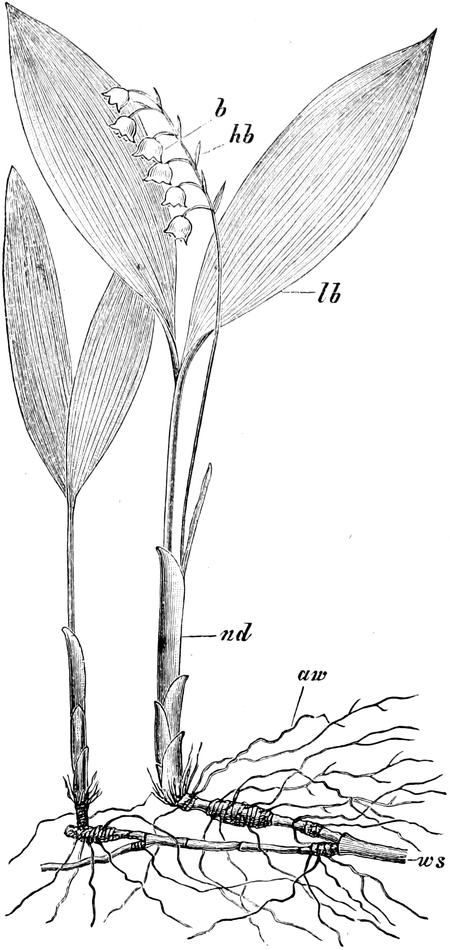
Fig. 125. Maiblume (Convallaria majalis). nd Niederblätter, lb Laubblätter, hb Hochblätter, b Blüte, ws Wurzelstock, aw Adventivwurzeln. Etwas verkleinert. Nach SCHENCK..
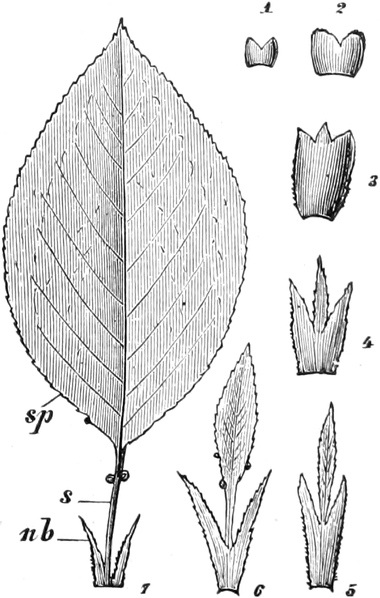
Fig. 126. Vogelkirsche (Prunus avium). Knospenschuppen 1–3 und die Übergangsformen 4–6 zum Laubblatt 7, sp Blattspreite, s Stiel, nb Nebenblätter. Etwas verkleinert. Nach SCHENCK.
Der Hauptsproß der Keimpflanze trägt zu unterst die Keimblätter oder Kotyledonen, die der Keimstengel, das Hypokotyl (Fig. 155), eines Keimes schon im Samen besitzt. Nur ein einziges solches Blatt kommt bei den Monokotylen vor; zwei Keimblätter sind bei den Dikotylen(Fig. 155) und bei manchen Gymnospermen, mehr als zwei bei anderen Gymnospermen vorhanden. Auf die Keimblätter folgen an den Erdsprossen und oft auch an den Luftsprossen mehr oder weniger schuppenförmige Niederblätter (Fig. 125 nd), an den Luftsprossen hierauf die Laubblätter (lb) und weiter oben wieder einfacher gestaltete Hochblätter (hb). Wir wollen zunächst die Laubblätter betrachten, da die übrigen Blätter nur Umbildungen von ihnen sind.
A. Die Laubblätter. Die Laubblätter sind äußerlich recht verschieden gebaut. Ihre Gestalt und ihre Gliederung werden deshalb bei der Diagnose der Pflanzen häufig verwertet. Meist ist das Laubblatt gegliedert, und zwar in die lebhaft grüne, flächenförmige und sehr dünne Blattspreite (Lamina, Fig. 126 sp), meist ungenau Blatt genannt, in den stengelartigen Blattstiel (Petiolus, Fig. 126 s) und an seiner Basis in den Blattgrund. Dieser kann als Blattpolster (Blattkissen) oder als Blattscheide (Vagina, Fig. 138 v) ausgebildet sein, die den Stengel oberhalb des Blattknotens mehr oder weniger umhüllt oder Nebenblätter (Stipulae, Fig. 126 nb) ausgliedert. Bei vielen Blättern fällt der Blattgrund aber nicht durch besondere Form und Größe auf, sondern geht allmählich in den Blattstiel über, oft auch in die Nebenblätter (Stipulae, nb). Fehlt der Stiel, so heißt das Blatt sitzend; ist er vorhanden, gestielt. Die Anfänge der Blattgliederung pflegen sich an den Laubblattanlagen schon sehr frühzeitig bemerkbar zu machen: die Primordialblätter sondern sich sehr bald, nachdem sie als Wülste am Vegetationspunkte sichtbar geworden sind, in das Oberblatt (Fig. 127 A und B, o) und in den Blattgrund (A und B, g). Aus dem Oberblatte geht die Blattspreite (Fig. 124 A, sp) und, wo vorhanden, auch der Blattstiel hervor (A, st). Dieser wird erst nachträglich, verhältnismäßig spät, durch interkalares Wachstum zwischen die schon vorhandene Blattspreite und den Blattgrund eingeschaltet, ist also niemals direkt am Stengel befestigt.
a) Die Blattspreite. Äußerer Bau (Fig. 129). Die in der Regel ausgesprochen dorsiventrale, oberseits meist dunkler grün gefärbte Blattspreite kann ungeteilt oder geteilt (Fig. 124 C), ja sogar aus Teilblättchen zusammengesetzt sein. Solche zusammengesetzten Blätter entstehen entweder durch Verzweigung aus den Rändern der Anlagen (Fig. 124 A) oder in seltenen Fällen (z. B. Palmen) durch Zertrennung der jugendlichen unverzweigten Spreiten bei ihrer Entfaltung. Den Monokotylen kommen vorwiegend einfache Blätter zu, während die zusammengesetzten bei Dikotylen häufig sind.
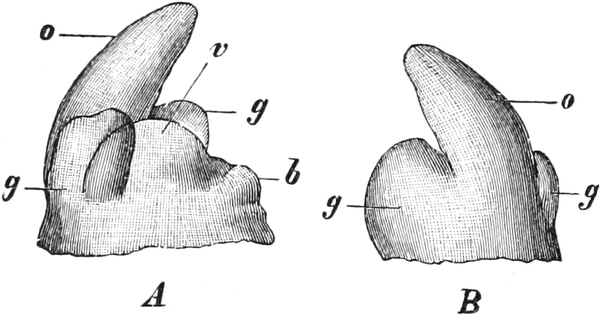
Fig. 127. Blattentwicklung bei der Feldulme (Ulmus campestris). A Der Vegetationskegel v, mit zwei Blattanlagen. Die jüngste Blattanlage b noch ungegliedert, die nächstältere gegliedert in Oberblatt o und Blattgrund g. B Das ältere Blatt von A, schräg von außen gesehen. Vergr. 58. Nach STRASBURGER.
Die Blattspreite heißt schildförmig, wenn der Blattstiel in ihrer Mitte zu entspringen scheint (Fig. 241). An der ungeteilten Spreite (Fig. 125 lb, 126 sp) ist der Rand nicht oder nur seicht eingeschnitten; er kann gesägt, gezähnt, gekerbt oder ausgeschweift sein. Sind tiefere Einschnitte vorhanden, so heißt das Blatt, wenn sie nicht bis zur Mitte der Spreitenhälften reichen, gelappt; wenn sie bis zu ihrer Mitte gehen, gespalten (Fig. 140 sb); wenn sie darüber hinaus sich fortsetzen, geteilt (Fig. 142 l). Nur wenn die einzelnen Abschnitte der Spreite so selbständig sind, daß sie als gesonderte Teilblättchen, kurz Blättchen genannt, an dem gemeinsamen Blattstiel oder an der ursprünglichen Mittelrippe der Spindel eingefügt sind, heißt das Blatt zusammengesetzt (Fig. 141, 1–5); in allen anderen Fällen gilt es als einfach. Die Teilung der Spreite ist fingerartig (Fig. 142) oder fiederartig (Fig. 141, 1–5), je nachdem die Einschnitte gegen den Grund der Spreite zusammenlaufen oder gegen deren Mittelrippe gerichtet sind.
Die Blättchen eines zusammengesetzten Blattes können während ihrer Entwicklung ähnlich wie die Anlage gegliedert werden, aus der sie hervorgingen; und an ihren Teilen kann sich die nämliche Erscheinung wiederholen. Alsdann spricht man von doppelt, dreifach und mehrfach zusammengesetzten Blättern. Häufig sind einfach und doppelt gefiederte (Fig. 141) Blätter, deren Blättchen beiderseits an Spindeln erster oder zweiter Ordnung eingefügt sind. Die Blättchen eines zusammengesetzten Blattes können ganzrandig oder mehr oder weniger tief eingeschnitten sein. Sie sitzen unmittelbar der Spindel an, oder sie sind gestielt und unter Umständen sogar, wie z. B. bei Phaseolus (Fig. 135 fg), Robinia, Mimosa, mit angeschwollenen „Gelenkpolstern“ an den Einfügungsstellen versehen.
An Spreitenanlagen, die nicht einfach bleiben, vielmehr während ihrer weiteren Entwicklung sich mehr oder weniger verzweigen, werden die seitlichen Abschnitte meist in basipetaler Richtung, also von der Spitze gegen die Basis fortschreitend, angelegt (Fig. 124 A); doch ist auch eine entgegengesetzte, akropetale Entwicklungsrichtung oder eine Kombination von beiden nicht ausgeschlossen.
Die gelappten und oft auch durchlöcherten Blattspreiten der Aracee Monstera kommen dadurch zustande, daß an den jugendlichen Blättern inselartige Gewebemassen zwischen den Rippen absterben und sich herauslösen. Auch die Abschnitte der fächerförmigen und fiederförmigen Palmenblätter entstehen durch nachträgliche Zertrennung der Blattspreiten, und zwar in der Weise, daß innerhalb der ungeteilt angelegten und gefalteten jugendlichen Blattspreiten vor deren Entfaltung entweder Gewebestreifen an den Oberkanten der Falten absterben oder die Zellwände hier verschleimen und sich voneinander trennen (so z. B. bei Cocos und Chamaerops)[72].
Die Blattspreiten ungestielter Blätter sitzen meist mit breiter Basis an dem Stengel. Greift diese Basis jederseits noch um den Stengel, so ist das Blatt stengelumfassend: z. B. bei Papaver somniferum; umgibt sie geschlossen den Stengel, dann heißt es durchwachsen (Bupleurum-Arten). Sind die Spreiten zweier gegenüberstehender Blätter am Grunde verbunden, dann sind sie verwachsen (Lonicera caprifolium). Setzt sich die Spreite abwärts am Stengel flügelartig fort, so wird das Blatt als herablaufend bezeichnet (Verbascum thapsiforme).
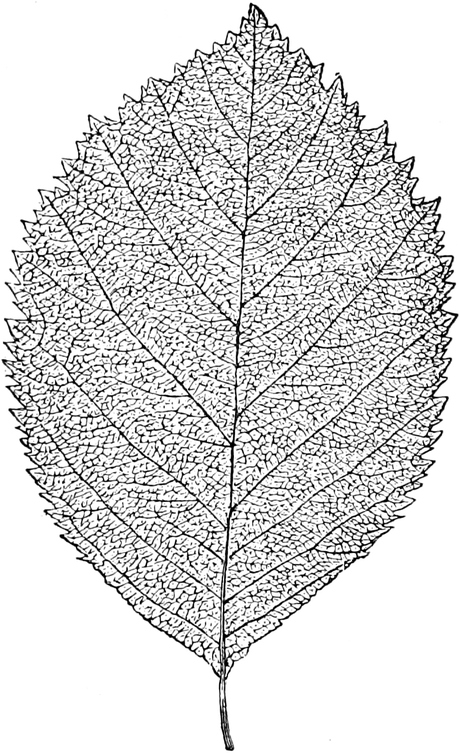
Fig. 128. Blatt des Rotdorns (Crataegus) mit Netznervatur. 3⁄4 nat. Gr. Nach NOLL.
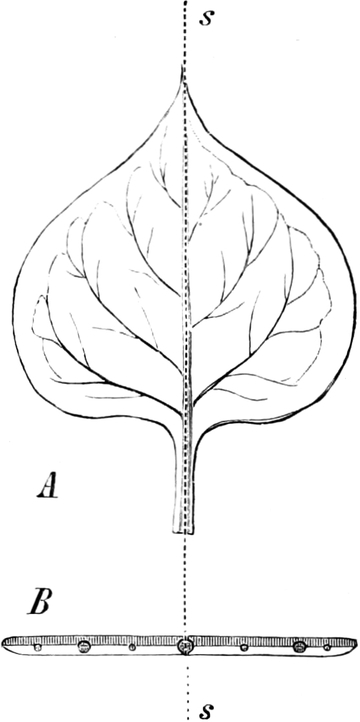
Fig. 129. Schematisches Bild eines dorsiventralen Laubblattes. Bei A in Flächenansicht. Bei B im Querschnitt. ss Die Symmetrieebene (Mediane). Nach STRASBURGER.
Die Blattspreiten sind von meist heller grünen Nerven (Adern) durchzogen, die ein reichverzweigtes Netzwerk bilden. Diese Blattnerven springen mit ihren dickeren Ästen (den Rippen) gewöhnlich auf der Blattunterseite mehr oder weniger hervor, während ihnen auf der Oberseite oft Furchen entsprechen. Die feineren Verästelungen werden erst sichtbar, wenn man die Spreite im durchscheinenden Lichte betrachtet. Vielfach ist ein in der Mediane der Spreite verlaufender Nerv besonders kräftig entwickelt; er heißt Mittelnerv oder Hauptnerv. Es können aber auch mehrere gleich starke Nerven als Hauptnerven ausgebildet sein (Fig. 124). Von allen solchen Nerven entspringen Seitennerven (Fig. 128).
Die Benennung der Nervatur richtet sich nach der Art des Nervenverlaufs. Die Blätter der meisten Nadelhölzer sind einnervig. Bei mehrnervigen Blättern stellt die gabelige Nervatur einen besonderen Typus dar, wobei ein Mittelnerv nicht zustande kommt. Sie ist für verschiedene Farne, außerdem für Ginkgo biloba bezeichnend. Im übrigen unterscheidet man bei den mehrnervigen Blättern die streifige Nervatur, bei der mehrere Hauptnerven annähernd parallel oder im Bogen in der Längsrichtung der Spreite verlaufen (Fig. 138 s) und gegen deren Ende zusammenneigen, und die netzartige Nervatur (Fig. 128), bei der die Nerven, an Stärke abnehmend, auseinander entspringen und schließlich in einem feinen Maschenwerk ihren Abschluß finden. Aber auch bei streifiger Nervatur pflegen die Hauptnerven durch schwache Quernerven (Anastomosen) verbunden zu sein. Bei netzartiger Nervatur unterscheidet man weiter zwischen fiedernervigen Blättern (Fig. 128), wenn einem medianen Hauptnerven schwächere Seitennerven entspringen, und handnervigen Blättern (Fig. 124, 140 sb), wenn mehrere annähernd gleich starke Hauptnerven an der Basis der Spreite auseinandergehen. Die streifige Nervatur kennzeichnet im allgemeinen die Monokotylen, die netzartige einige Farne und die meisten Dikotylen.
Innerer Bau. Der innere Bau der Laubblätter ist sehr mannigfaltig, aber meist ausgesprochen dorsiventral (bifazial): die Gewebe auf der Oberseite sind anders ausgebildet als auf der Unterseite (Fig. 129, 132).
Viele Blätter, besonders solcher Arten, die stark besonnte, verhältnismäßig trockene Standorte bewohnen, doch z. B. auch vieler submerser Wasserpflanzen, sind aber oben und unten gleich, also isolateral (äquifazial, zentrisch) gebaut (Fig. 185, 191).
a) Nerven. Sie enthalten in Ein- oder Mehrzahl die Leitbündel der Blätter. Die reiche Verzweigung, die Ausbildung der Leitbündel als ein sehr feines Netzwerk, das sich über die ganze Blattspreite ausdehnt, ist für die Blattspreiten besonders bezeichnend. Es läßt sich durch Mazeration der Blätter als sehr zierliches Blattskelett isolieren.
Der Bau der Leitbündel in der Blattspreite entspricht meist dem im Stengel. Bei den Phanerogamen sind die Blattbündel gewöhnlich kollateral. Da sie die Fortsetzungen der Blattspurbündel des Stengels sind, so wenden sie ihren Gefäßteil nach oben, ihren Siebteil nach unten.
Das Xylemparenchym der Blattbündel ist meist zu Platten angeordnet, die auf den Bündelquerschnitten als radiale Zellreihen im Gefäßteile erscheinen.
Im dem Maße, wie die Bündel sich in der Blattspreite mehr und mehr verzweigen und schwächer werden, vereinfacht sich ihr Bau. Zunächst schwinden die Tracheen; nur netz- und schraubenförmig verdickte Tracheïden bleiben als wasserleitende Bahnen im Gefäßteile zurück. Zugleich wird der Siebteil reduziert. Bei den Angiospermen, deren Siebröhren von Geleitzellen begleitet werden, nehmen die Siebröhren an Weite ab, während die Geleitzellen ihren früheren Durchmesser behalten. Schließlich unterbleibt in den Zellen, die Siebröhren fortsetzen, die Teilung in Siebröhrenglieder und Geleitzellen: es werden Übergangszellen gebildet. Mit diesen hört der Siebteil auf, während der Gefäßteil noch durch kurze Schraubentracheïden vertreten ist und schließlich blind endigt (Fig. 130).
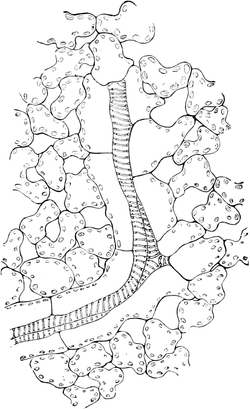
Fig. 130. Leitbündelendigung im Blatt von Impatiens parviflora. Vergr. 240. Nach SCHENCK.
Den Nadeln der Koniferen, die meist nur von 1–2 medianen längs verlaufenden Leitbündeln durchzogen werden, fehlen alle feineren Bündelverzweigungen. Den Außenrändern des Xylems folgt ein Saum eigenartiger, toter, tracheïdaler Zellen mit Hoftüpfeln, den Außenrändern des Phloëms ein entsprechender Saum eiweißreicher Zellen. Dieses Transfusionsgewebe, das mehr oder weniger tief in das lebende Blattgewebe beider Blatthälften eindringt, vermittelt bei den Koniferen offenbar den Stoffverkehr zwischen Nerv und diesem Blattgewebe.
Die Leitbündel werden von Parenchymscheiden umgeben, die in den dickeren Nerven vielschichtig sind, einschichtig aber selbst ihre feinsten Verzweigungen umschließen. Die Zellen dieser Scheiden sind meist gestreckt und stets lückenlos verbunden. Den Leitbündeln folgen auf einer oder beiden Seiten (Fig. 131, 1) häufig auch Stränge von Sklerenchymfasern. Sie bilden namentlich an den Siebteilen der stärkeren Bündel im Querschnitte sichelförmige Beläge, veranlassen vorwiegend das Vorspringen der Blattrippen an der Spreitenunterseite und machen die Spreite biegungsfest. Stränge aus Sklerenchym kommen bei manchen Blättern auch zwischen den Nerven vor (Fig. 131, 1), ferner auch am Blattrande; solche sklerenchymatischen oder kollenchymatischen Verstärkungen des Randes dienen zum Schutze gegen scherende Kräfte, die die Blattflächen zu zerreißen suchen (Fig. 131, 2). Große Blattspreiten, denen ein solcher Schutz am Rande fehlt, werden im Freien vom Winde zerfetzt (Banane).
b) Epidermis und Mesophyll. Das Laubblatt wird allseits von einer typischen Epidermis umschlossen. Sie ist auf der Blattunterseite besonders reich an Spaltöffnungen, die der Oberseite nicht selten ganz fehlen (z. B. bei fast allen Laubbäumen).
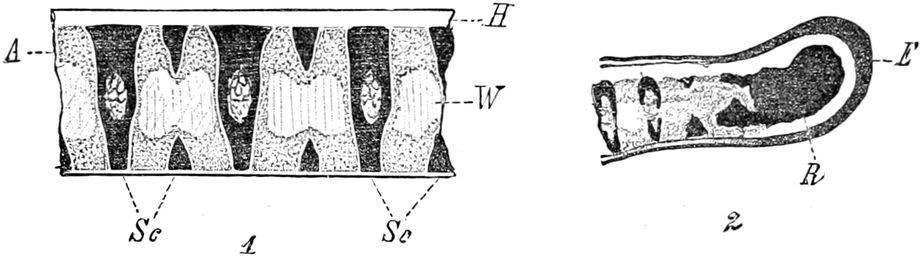
Fig. 131. Blatt der Liliacee Phormium tenax (des neuseeländischen Flachs). 1 Blattquerschnitt. Sc Sklerenchymplatten und -stränge. A Grünes Assimilationsparenchym. H Epidermis (Wasserspeicher). W Farbloses Mesophyll (innere Wasserspeicher). 2 Randpartie desselben Blattes. E Stark verdickte und gebräunte Epidermis. R Randbündel aus Sklerenchymfasern. Nach NOLL.
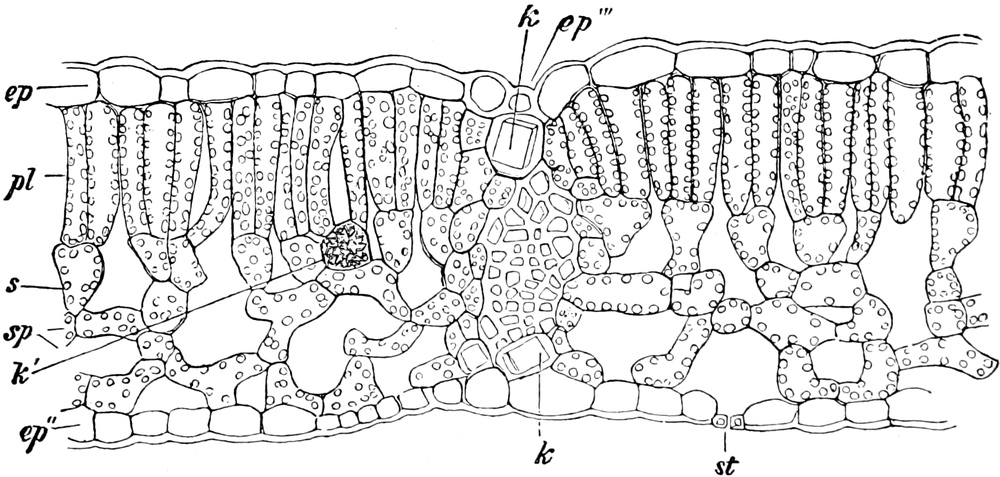
Fig. 132. Querschnitt durch das Blatt der Buche (Fagus silvatica). ep Epidermis der Oberseite, ep″ Epidermis der Unterseite, ep‴ längsgestreckte Epidermiszellen über einem der Leitbündel, die der Querschnitt durch das Blatt der Quere nach trifft, pl Palisadenparenchym, s Trichterzellen, sp Schwammparenchym, k kristallführende Sekretzellen, k′ eine Kristalldruse, st Spaltöffnung. Vergr. 360. Nach STRASBURGER.
Man findet an der Unterseite durchschnittlich 100–300 Spaltöffnungen auf dem Quadratmillimeter; doch kann diese Zahl in einzelnen Fällen bis über 700 steigen. Isolaterale Blätter pflegen auf beiden Seiten, Schwimmblätter nur oberseits Spaltöffnungen zu besitzen.
Die Blattepidermis kann auch ein Wasserspeicher sein. Besonders in diesem Falle ist sie nicht selten mehrschichtig.
Das von der Epidermis umschlossene Gewebe der Blattspreite zwischen den Rippen besteht hauptsächlich aus Parenchym, das man als Mesophyll bezeichnet. Darin sind die feineren Nervenäste eingebettet. Auf die Epidermis der Oberseite (Fig. 132 ep) pflegen eine bis drei senkrecht zur Oberfläche gestreckte Lagen zylindrischer (schlauchförmiger) Parenchymzellen zu folgen, die Palisadenzellen (pl). Sie sind besonders chlorophyllreich, bilden also ein Assimilationsparenchym und sind meist seitlich voneinander durch enge Interzellularen getrennt. Oft neigen die Palisadenzellen mit ihren unteren Enden deutlich zu Büscheln zusammen (Fig. 132) und schließen an trichterförmig erweiterte Zellen (die Trichterzellen s) an.
Die Dicke der Palisadenschicht ist bei den Blättern mancher Bäume, z. B. der Rotbuche, verschieden: in den „Schattenblättern“ viel geringer als in den „Sonnenblättern“. Ein direkter Einfluß der Belichtung liegt da aber nach den Untersuchungen NORDHAUSENs[73] nicht vor. Es gibt auch Pflanzen (z. B. Lactuca scariola), die nur in stark beleuchteten Laubblättern Palisaden ausbilden.
In manchen Blättern kommen an Stelle der Palisadenzellen Schichten von Zellen vor, deren Elemente nicht senkrecht, sondern parallel zur Oberfläche, längs oder quer gestreckt sind, so z. B. bei vielen Monokotylen. In den Nadeln der Kiefer und bei anderen Pflanzen findet man ferner an Stelle der Palisaden große plattenförmige Zellen, deren innere Oberfläche durch Einfaltungen der Zellmembran bedeutend vergrößert ist (Faltenparenchym, Fig. 133 A, B fp, C).
An das Palisadenparenchym schließt ein viel chlorophyllärmeres Parenchym aus vorwiegend unregelmäßig gestalteten Zellen mit weiten Interzellularen an, das Schwammparenchym (Fig. 132 sp), das bis an die Epidermis der Unterseite (ep″) reicht. Die weiten Interzellularen stehen mit den Spaltöffnungen in der Epidermis der Blattunterseite in unmittelbarer Verbindung und dienen dem Gastransport zu den Palisadenzellen.
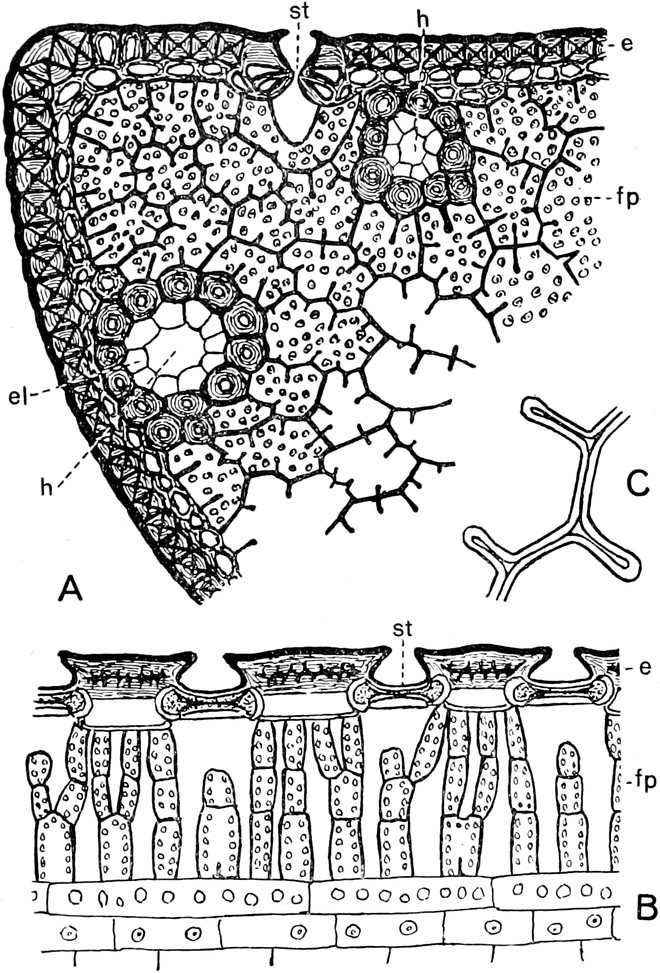
Fig. 133. Nadel von Pinus silvestris quer und längs. A Querschnitt, B medianer Längsschnitt. Vergr. 160. e Epidermis, st Spaltöffnung darunter, fp Assimilationsfaltenparenchym, h Harzkanäle, das dünnwandige Drüsenepithel (el) von einer Sklerenchymscheide umgeben. C Stück der Zellmembranen aus dem Faltenparenchym. Vergr. 380.
HABERLANDT berechnet für einen Quadratmillimeter Blattfläche bei Ricinus communis durchschnittlich im Palisadenparenchym der Oberseite 403200, im Schwammparenchym der Unterseite 92000 Chlorophyllkörner. Somit würden in diesem Falle 82% der Chlorophyllkörner der Blattoberseite, 18% der Blattunterseite angehören.
Nicht selten liegt auch im Mesophyll farbloses Wassergewebe (Fig. 131 W).
Epitheme und Wasserspalten[74]. Bei gewissen Familien der Mono- und Dikotylen bildet das Mesophyll der Blattlamina lokal zwischen besonders angeschwollenen Leitbündelendigungen und der Epidermis eigenartige Gewebepfropfen aus. Sie bestehen aus kleinen lebenden Zellen mit farblosem Zellsaft, die mit Wasser gefüllte Interzellularen zwischen sich lassen. Diese Gewebepfropfen nennt man Epitheme. Sie vermitteln die Ausscheidung von Wasser in tropfbar flüssiger Form. Dabei verhalten sie sich der Hauptsache nach passiv; sie sind nur Stellen geringsten Filtrationswiderstandes. Über solchen Epithemen, in die Tracheïden münden, liegen in der Epidermis eigenartig ausgebildete Spaltöffnungsapparate: die Wasserspalten (Fig. 134), die größer als die Luftspalten sind. Ihre beiden Schließzellen sind entweder lebend und können den Spalt, gleich den Luftspalten, öffnen und schließen, oder sie verlieren (in anderen Fällen) frühzeitig den lebenden Inhalt; der Spalt zwischen ihnen steht dann unverändert weit offen. Die für die Schließzellen der Luftspalten so bezeichnenden Verdickungsleisten werden bei den Wasserspalten gewöhnlich nicht ausgebildet. Die ausgeschiedene Flüssigkeit ist oft reich an kohlensaurem Kalke, der alsdann, wie an den Blatträndern vieler Steinbrech- (Saxifraga-) Arten, in weißen Schüppchen die Wasserspalten überdeckt.
Vielfach haben junge Blätter an ihren Spitzen und den Spitzen ihrer Zähne über Epithemen Wasserspalten, die am fertigen Blatte vertrocknet sind. Selbst bei submersen Pflanzen, bei denen keine Luftspalten ausgebildet werden, kommen an den Blattspitzen nicht selten Wasserspalten vor. Sie pflegen frühzeitig abzusterben, werden auch wohl mit dem angrenzenden Gewebe zerstört, so daß offene Grübchen, die Apikalöffnungen, entstehen, durch die Wasser und darin gelöste Stoffe hervorgepreßt werden.
Auch in vielen Nektarien innerhalb und außerhalb der Blüten wird die zuckerhaltige Flüssigkeit aus Wasserspalten („Nektarspalten“) ausgeschieden.
Funktionen der Blattspreiten. Die Blattspreiten sind, wie schon gesagt, die wichtigsten Ernährungs-, d. h. Assimilations- und zugleich die Transpirationsorgane der Kormophyten. Ihr äußerer und innerer Bau, ihre Anordnung und ihre Richtung zum Lichteinfall entsprechen diesen Funktionen. Die Zerlegung der Kohlensäure ist an das Licht, außerdem an das grüne Chlorophyll gebunden. So versteht man die grüne Farbe, die in der Regel sehr große Oberflächenentwicklung der Blattspreiten, ihre bei geringer Dicke flächenförmige Ausbildung und ihren meist dorsiventralen Bau. Je größer die Oberfläche ist, um so mehr chlorophyllhaltige Zellen werden ohne gegenseitige Beschattung dem Lichte ausgesetzt, um so leichter kann die Kohlensäure aus dem spärlichen Vorrate der Luft aufgenommen werden, und um so lebhafter wird zugleich die Verdunstung der Spreite, ihre Transpiration, sein müssen. Da schon wenige chlorophyllreiche Zellschichten das von außen in das Blatt einströmende Licht so verändern, daß es in tieferen Schichten der Kohlensäurezerlegung nicht mehr ausreichend zu dienen vermag, so ist das Assimilationsgewebe vorzugsweise oberseits gelegen. Die Kohlensäure der Luft wird aber hauptsächlich von der Unterseite des Blattes durch die Spaltöffnungen aufgenommen; infolgedessen kann sie um so schneller durch die weiten Interzellularen des Schwammparenchyms, das im wesentlichen ein Durchlüftungsgewebe ist, zu den assimilatorisch besonders tätigen oberen Gewebeschichten vordringen, je dünner das Blatt ist.
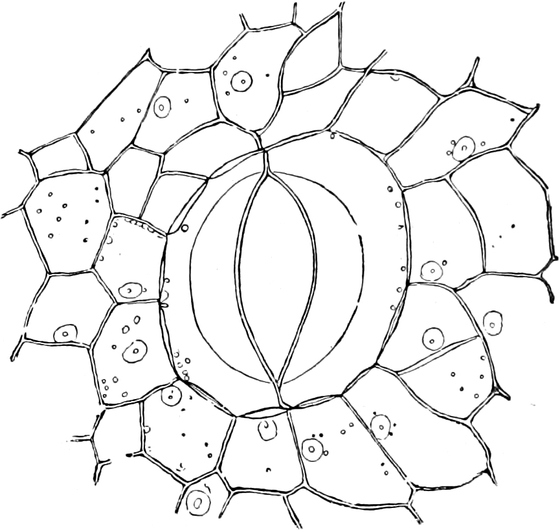
Fig. 134. Wasserspalte am Blattrande der Kapuzinerkresse (Tropaeolum majus) nebst angrenzenden Epidermiszellen. Vergr. 240. Nach STRASBURGER.
Das reich verzweigte Leitbündelnetz ermöglicht es, die Assimilate von allen Teilen des Blattes schnell nach den Stengeln abzuleiten, nachdem sie aus den Mesophyllzellen zu den feineren Verästelungen des Nervennetzes hingeschafft worden sind; zugleich versorgt es durch seine feine Zerteilung, die im Gegensatze zu dem wasserleitenden Stengel für die wasserabgebende Blattspreite bezeichnend ist, auf kürzestem Wege alle Teile der transpirierenden Blattspreite mit Wasser. Schließlich erhöht die Aderung auch noch die Festigkeit der Spreite.
Wie wir sahen, sind die Blätter am Stengel so angeordnet, daß die Blattspreiten, die an aufrechten Sprossen nahezu horizontal stehen, ohne allzu starke gegenseitige Beschattung dem Lichte möglichst ausgesetzt werden. Viele Blätter besitzen außerdem Bewegungsvermögen und können ihre Spreiten gegen das einfallende Licht einstellen. Häufig, so namentlich an dorsiventralen plagiotropen Zweigen, fügen sich die Blattspreiten, die sämtlich ihre Oberseiten gegen das Licht wenden, bei Betrachtung von oben mehr oder weniger dicht zu einem Blattmosaïk aneinander.
b) Der Blattstiel ist meist stengelartig ausgebildet. Sein innerer Bau gleicht alsdann dem der Hauptrippe der Spreite oder wohl auch der Sproßachse. Die Leitbündel sind jedoch bei den Angiospermen oft in einem nach oben offenen Bogen angeordnet; typisches Assimilationsgewebe fehlt dem Stiele ganz. Der Blattstiel dient dazu, die Blattspreite von der Stengelachse weg in den Raum hinaus, also dem Licht entgegen zu strecken. Sind Blattstiele vorhanden, so führen Teile von ihnen auch meist die Einstellung der Spreiten gegen das Licht aus.
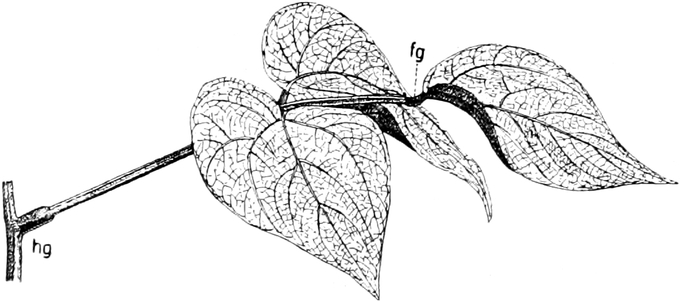
Fig. 135. Unpaarig gefiedertes Blatt von Phaseolus mit Blattstielgelenken (Polstern). hg Polster des Blattstiels (Hauptgelenk), fg Gelenk eines der Fiederblätter. 1⁄4 nat. Gr.
Manchmal werden die Einstellungsbewegungen durch besondere örtliche Anschwellungen an der Basis oder an der Spitze oder an beiden Stellen des Blattstieles ausgeführt, die wie Gelenke arbeiten: Blattkissen oder Blattpolster, so besonders bei vielen Leguminosen (Fig. 135).
An den Jahrestrieben der Holzgewächse kommt das Blattmosaïk außer durch die Blattbewegungen nicht selten auch durch die verschiedene Länge der Blattstiele (und durch die verschiedene Größe der Blattspreiten) zustande: die unteren Blätter haben viel längere Stiele (und größere Spreiten) als die oberen; so sehr auffallend z. B. beim Ahorn oder der Roßkastanie. Auch bei solchen Gewächsen, bei denen die Laubblätter eine Rosette bilden, kann man dies beobachten, so besonders schön an den schwimmenden Rosetten der Wassernuß (Trapa natans).
Gestielte Blattspreiten, die bei den Dikotylen weit häufiger als bei den Monokotylen sind, setzen sich von den Blattstielen entweder scharf ab, oder sie laufen an ihnen herab, so daß die Stiele geflügelt erscheinen.
c) Der Blattgrund[75]. Ist der Blattgrund des Laubblattes in besonderer Weise ausgebildet, so trägt er meist zum Schutze der Knospe und des nächst jüngeren Blattes dadurch bei, daß er auch dann noch die Knospe umhüllt, wenn die Blattspreite sich von der Knospe losgelöst und entfaltet hat.
Vielfach werden aus dem Blattgrunde Nebenblätter oder Stipulae gebildet, in typischen Fällen in Zweizahl, also je eines zu beiden Seiten des zugehörigen Blattes. Sie können ganz unscheinbar (Fig. 126 nb) oder ansehnlich (Fig. 136), gelblich oder grün gefärbt sein. Haben sie nur die Knospen zu schützen, so sind sie meist gelblich oder bräunlich gefärbt, im Innern viel einfacher als die Blattspreiten gebaut und fallen frühzeitig ab.
Wenn sich aber die Nebenblätter an der Kohlensäureassimilation der Pflanze beteiligen (Fig. 207), so sind sie grün gefärbt und wie die Blattspreiten gebaut.
Die Nebenblätter sind sehr verschieden ausgebildet. Bei vielen Gewächsen sind es zwei freie Blättchen (Fig. 126 nb). Bei anderen sind sie je mit ihrem einen Rande dem Blattstiel angewachsen (Vaginalstipeln, Fig. 136 A), bei wieder anderen in verschiedener Weise miteinander verwachsen, nämlich entweder zu einem zungenförmigen Gebilde in oder oberhalb der Blattachsel (zu der Axillarstipel, Fig. 136 B) oder zu einem dem Blatte opponierten Gebilde (zu der opponierten Stipel). Bei gegenständiger Blattstellung können die Nebenblätter der Blattpaare paarweise mit ihren einander zugekehrten Rändern zu Interpetiolarstipeln (Fig. 137) verwachsen. Die Nebenblätter können aber auch an ihren beiden Blatträndern miteinander verwachsen und den Stengel als vollständig geschlossene Tüte umfassen, die den Stengel und die nächst jüngere Blattanlage in der Knospe umhüllt; die Tüte ist aus einer opponierten Stipel bei dem in Zimmern oft kultivierten Ficus elastica hervorgegangen, wo sie durch das neu sich entfaltende Blatt aufgeschlitzt und an ihrem Grunde abgesprengt wird; bei den Polygonaceen ist sie dagegen eine Axillarstipel, die, von den Blättern an ihrer Spitze durchbrochen, als trockene Scheide (Ochrea, Fig. 676) am Stengel zurückbleibt.
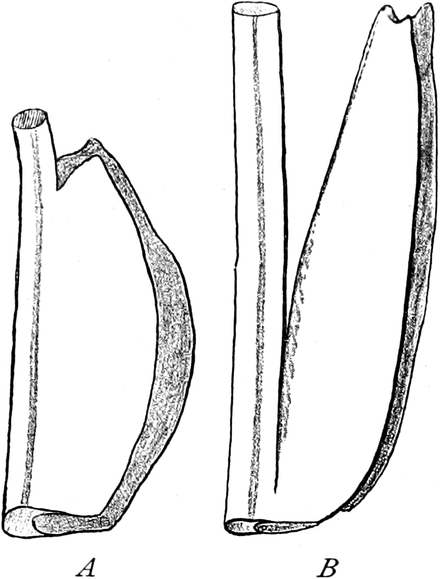
Fig. 136. Nebenblätter an den Blattstielbasen von Jugendblättern der Seerose (Nymphaea alba). A Vaginalstipeln, B Axillarstipel. Vergr. 12. Nach GLÜCK.
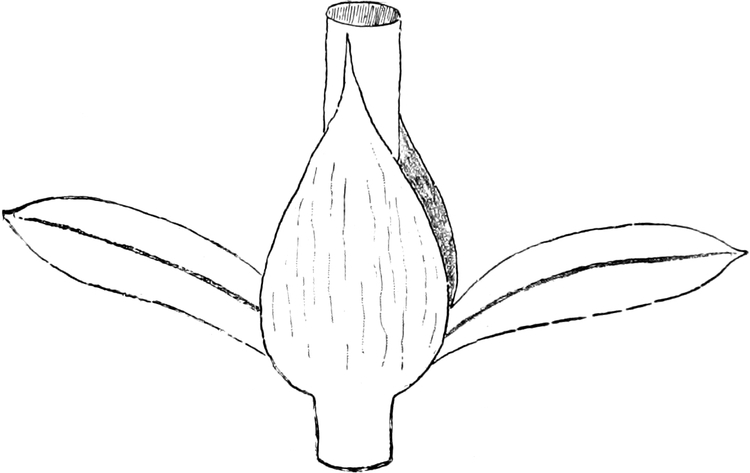
Fig. 137. Stengelknoten von Paronychia argentea (Caryophyllacee). Rechts und links: ein Blattpaar. Vorn und hinten: je eine interpetiolare Stipel. Vergr. 5. Nach GLÜCK.
Bei manchen Arten von Galium, wo die Nebenblätter vollständig dem Oberblatt gleichen, glaubt man vier-, bei anderen sechs- oder achtblättrige Blattquirle vor sich zu haben, während tatsächlich nur zwei Blätter in dekussierter Stellung mit einer je nach der Art verschiedenen Zahl von Nebenblättern den Wirtel bilden: nur zwei dieser Blattgebilde nämlich tragen Achselknospen.
Sehr häufig bei Monokotylen, seltener bei den Dikotylen (z. B. Umbelliferen) ist aus dem Blattgrund eine Scheide geworden. Bei den Gräsern ist sie (Fig. 138 v) auf der einen Seite gespalten, bei den Riedgräsern dagegen völlig geschlossen. Die Scheide der Gräser, die den unteren Teil des noch wachsenden und weichen Internodiums schützt und stützt, setzt sich am Grunde der ungestielten Blattspreite in einen häutigen Auswuchs, die Ligula (l), fort; an ihrer Basis aber ist sie unmittelbar oberhalb des Stengelknotens zu einem „Gelenk“ (dem Gras„knoten“) angeschwollen (Fig. 138 k).
Die Ligula entspricht nach GLÜCK den miteinander verwachsenen Spitzen der Vaginalstipeln, aus denen die Blattscheide hervorgegangen ist.
Heterophyllie und Anisophyllie. Manche Pflanzen bilden verschieden gestaltete Laubblätter aus, entweder in verschiedenen Zonen des Stengels (Heterophyllie, Fig. 139, 140) oder in einer und derselben Zone auf den beiden Seiten des dorsiventralen Sprosses (Anisophyllie, Fig. 141). Mit Anisophyllie ist oft Asymmetrie der Blattspreiten verbunden. Heterophyllie zeigen viele Wasserpflanzen mit bandförmigen oder zerteilten untergetauchten Wasserblättern, die an das Leben im Wasser angepaßt sind, und mit viel weniger zerteilten, gestielten Luftblättern (Fig. 139). Die Blätter, die der Efeu zur Zeit der Blütenreife entwickelt, sind wesentlich anders gestaltet als die, die er vorher ausgebildet hat. Noch auffälliger ist dieser Unterschied bei Eucalyptus globulus, der zunächst ovale und sitzende, später sichelförmige Blätter ausbildet. Häufig sind die untersten Blätter von Keimpflanzen (Jugend- oder Primärblätter) einfacher geformt als die übrigen (Folgeblätter).
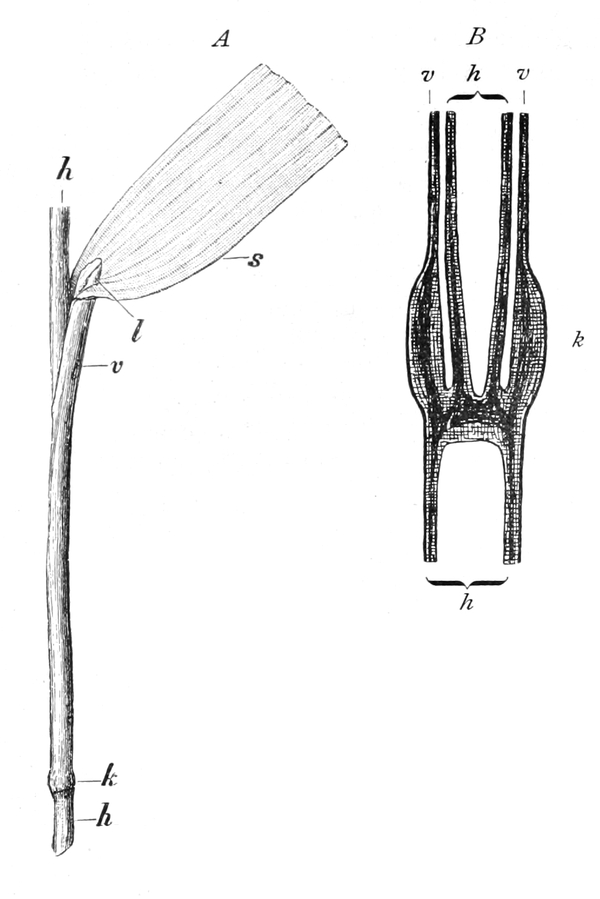
Fig. 138. A Stengel und Blattstück einer Graminee. Nach SCHENCK. B Gras„knoten“ im Längsschnitt, etwas schematisiert. h Halm, v Blattscheide, k Anschwellung der Blattscheide über dem Stengelknoten, s Stück der Blattspreite, l Ligula. Nat. Gr.
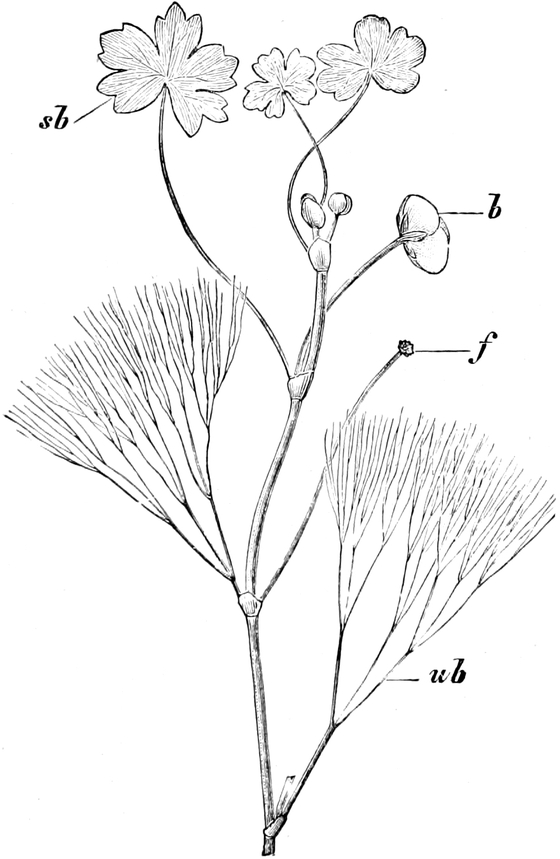
Fig. 139. Batrachium aquatile. Wasserhahnenfuß. ub Untergetauchte Blätter, sb schwimmende Blätter, b Blüte, f Fruchtanlage. Verkleinert. Nach SCHENCK.
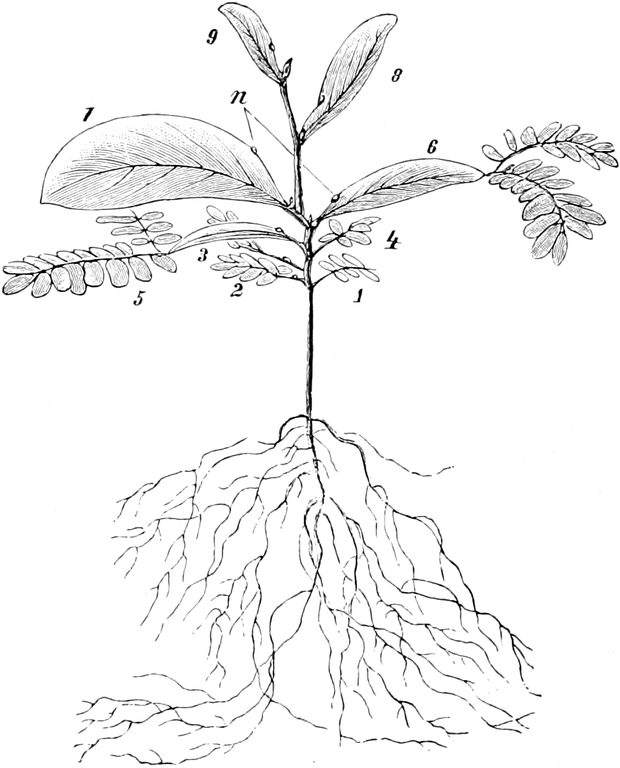
Fig. 140. Keimpflanze von Acacia pycnantha. Die Keimblätter schon abgeworfen. 1–6 Jugendblätter, 1–4 einfach-, die folgenden doppelt gefiedert. An den Blättern 5 und 6 sind die Blattstiele bereits senkrecht abgeflacht. Bei den folgenden Blättern (7, 8, 9) sind sie als Phyllodien ausgebildet. n Nektarien an den Phyllodien. Vergr. ca. 1⁄2. Nach SCHENCK.
B. Die Keimblätter. Die Keimblätter oder Kotyledonen, die gestielt oder ungestielt sein können, sind fast immer viel einfacher gestaltet als die Laubblätter, wenn sie auch oft im wesentlichen dieselbe Gliederung wie diese erkennen lassen.
Sie können dauernd von der Samenschale umschlossen und unter der Erde verborgen bleiben (hypogäische). In diesem Falle sind sie gewöhnlich fleischige Reservestoffbehälter und bauen sich hauptsächlich aus Speicherparenchym auf. Die epigäischen, die die Samenschale sprengen und über der Erde erscheinen, pflegen zu ergrünen und alsdann einige Zeit wie die Laubblätter Kohlensäure zu assimilieren. Bei den Monokotylen, wo nur ein Keimblatt ausgebildet wird, verläßt gewöhnlich nur der Scheidenteil des Kotyledo den Samen; er kann unterirdisch und farblos bleiben oder aus der Erde hervorwachsen und ergrünen.
C. Die Nieder- und Hochblätter sind in ihren Anlagen von Laubblattanlagen nicht zu unterscheiden, stehen aber fertig ausgebildet in ihrer Gliederung den Laubblättern bedeutend nach, haben gewöhnlich Schuppenform und keinen Stiel. Sie bilden sich durch Vergrößerung von Primordialblättern, und zwar vornehmlich aus deren Blattgrund aus, während die Spreite mehr oder weniger unentwickelt bleibt (Fig. 126, 1–6, 142). Die Niederblätter, farblose oder grüne Schuppen, gehen am Luftsprosse oft der Bildung der Laubblätter voraus (Fig. 125 nd). Sie sind ferner als farblose, größere oder kleinere, oft kaum sichtbare und meist kurzlebige Schuppen vielfach die einzigen Blattgebilde der Rhizome, denen, entsprechend ihrem Leben im Dunkeln, die Laubblätter meist fehlen (Fig. 125 ws, 143). Die Hochblätter dagegen, von gleichem Bau und gleicher Beschaffenheit wie die Niederblätter des Luftsprosses, manchmal aber andersfarbig, pflegen oben am Stengel auf die Laubblätter als Deckblätter oder Brakteen für die Blüten und Blütensprosse zu folgen. Der innere Bau beider Blattarten ist wesentlich einfacher als der der Laubblätter. Nieder- und Hochblätter sind an der Ernährung der Pflanze nicht oder kaum beteiligt, sondern meist Schutzorgane für die jungen Blattspreiten oder die Stengelknospen. Sie sind aber meist durch Zwischenformen mit den Laubblättern verbunden (Fig. 126, 142).
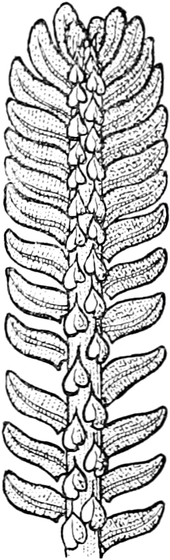
Fig. 141. Anisophyllie der dorsiventralen Sprosse von Selaginella Martensii; auf der Oberseite des Stengels zwei Reihen sehr kleiner asymmetrischer grüner Blätter, auf jeder Flanke eine Reihe viel größerer asymmetrischer Laubblätter. Etwas vergr.
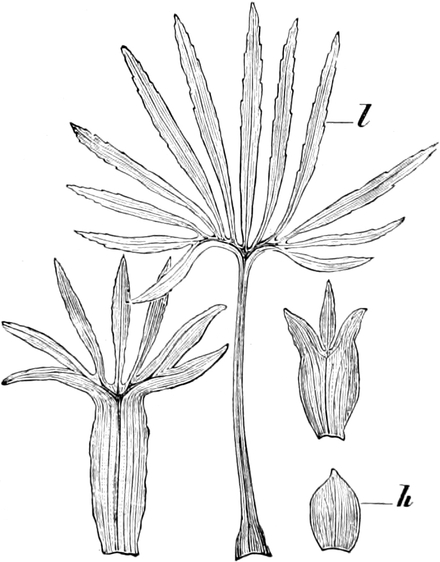
Fig. 142. Helleborus foetidus. Laubblatt (l) und Übergänge zum Hochblatt (h). Verkl. Nach SCHENCK.
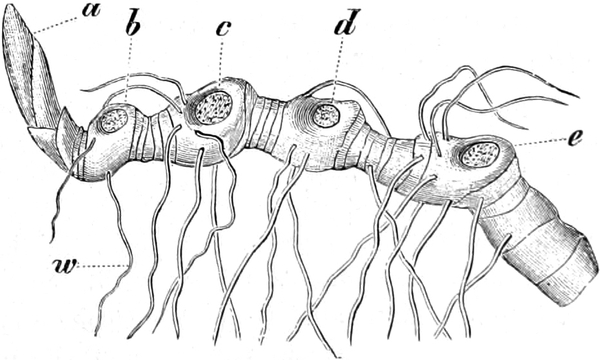
Fig. 143. Rhizom von Polygonatum multiflorum. a Knospe für den nächstjährigen oberirdischen Trieb, b Narbe des diesjährigen Triebes, c, d und e Narben der drei vorausgegangenen Jahre. w Wurzeln. Auf 3⁄4 verkleinert. Nach SCHENCK.
Daß die Niederblätter und Hochblätter der Hauptsache nach als Hemmungsbildungen von Laubblättern aufzufassen sind, lehrt nicht nur ihre Entwicklungsgeschichte, sondern auch die Möglichkeit, ihre Anlagen zu Laubblättern werden zu lassen. So gelang es GOEBEL, Blattanlagen, welche Niederblätter erzeugt hätten, zur Laubblattbildung dadurch zu bewegen, daß er die Sprosse entgipfelte und entblätterte. Unterirdische Stengel, die man zwingt, sich im Tageslichte zu entwickeln, bilden Laubblätter aus denselben Anlagen, die unter der Erde zu Niederblättern geworden wären. Im inneren Bau sind Nieder- und Hochblätter aber nicht ausschließlich Hemmungsbildungen von Laubblättern, sondern zeigen oft diesen gegenüber besondere Differenzierungen, die mit ihren Aufgaben zusammenhängen können[76].
3. Lebensdauer der Blätter. Die Blätter haben bei vielen Gewächsen eine kürzere Lebensdauer als die Sproßachsen, an denen sie entstanden sind. In diesem Falle werden sie bei den meisten Bäumen und Sträuchern von den Sproßachsen abgestoßen (Blattfall) oder verfaulen am Stengel (bei Erdsprossen); an den Luftsprossen der Kräuter sterben sie meist mit den Stengeln ab. Blattnarben am Stengel geben die Stellen an, wo früher Blätter gesessen haben. Pflanzen, deren Laubblätter mehrere Vegetationsperioden tätig bleiben, nennt man immergrün im Gegensatze zu den sommergrünen, bei denen sie nur eine Vegetationsperiode dauern.
Der Blattfall der phanerogamen Holzgewächse wird durch eine parenchymatische Trennungsschicht vermittelt, die am Grunde des Blattstiels meist erst kurz vor dem Blattfall, mit oder ohne vorausgehende Zellteilungen, ausgebildet wird. Alle mechanischen Gewebe des Blattstiels sind an dieser Stelle sehr reduziert; verholzt sind dort nur die Gefäße. Die Blattablösung erfolgt in der Trennungsschicht meist durch Abrundung der Zellen gegeneinander und durch Verschleimung ihrer Mittellamellen, während die Gefäße und die Siebröhren zerrissen werden. Die Blattnarbe wird dadurch abgeschlossen, daß die äußersten Zellschichten der Wundfläche sich in (verholzendes) Kutisgewebe umwandeln, worunter meist noch durch ein Korkkambium eine Korkschicht gebildet wird, die sich an die Korkschicht des Stengels anschließt.
δ) Die Verzweigung der Sprosse[65] u. [77]. Je mehr Laubblätter der Sproß im Sonnenlichte ausbreiten kann, um so mehr organische Substanz vermag er im Assimilationsvorgange zu bilden. In dieser Hinsicht ist, wie leicht ersichtlich, ein verzweigtes Sproßsystem einem aufrechten Einzelsprosse weit überlegen. Jenes kann Blattflächen dem ungeschwächten Lichte allseits über einen größeren Raum darbieten.
Wie bei den thallösen Pflanzen kommen die Verzweigungen der Sprosse in zweierlei Weise zustande: entweder, doch nur selten, durch Gabelung, Dichotomie, einer Mutterachse in zwei Tochterachsen, oder meist durch seitliche Neubildungen von Tochterachsen an einer weiter wachsenden Mutterachse, also durch seitliche Verzweigung.
A. Die dichotome Verzweigung. Sie ist auf die Sprosse einiger Lycopodiaceen beschränkt.
Bei solchen Bärlappgewächsen gabelt sich ein Sproß folgendermaßen in zwei gleichwertige Teile: Der kreisförmige Querschnitt des Vegetationspunktes, der gewöhnlich keine Scheitelzelle mehr erkennen läßt, wird elliptisch. Den beiden Brennpunkten der Ellipse entsprechend wölben sich die zwei neuen Vegetationskegel vor (Fig. 144). Die aufeinanderfolgenden Gabelungen können in rechtwinkligen Ebenen zueinander stattfinden; in diesem Falle breitet sich das Verzweigungssystem nicht in einer Ebene, wie in dem Schema (Fig. 82 a), sondern allseits im Raume aus.
Nicht selten weicht bei diesen Gewächsen, z. B. bei Selaginella, das Verzweigungssystem in seinem Aussehen stark von dem Typus dadurch ab, daß immer nur der eine Gabelast jedes Zweigpaares einer Ordnung weiter wächst und sich wieder gabelt oder, wie man auch sagt, die Verzweigung fortsetzt (Fig. 145). Stellen sich alsdann alle die Zweigstücke, die jedesmal die Verzweigung fortsetzen, annähernd in eine Richtung ein, die anderen aber schräg dazu, so entsteht ein Verzweigungssystem, das einem razemösen (Fig. 82 b) zum Verwechseln ähnlich werden kann. Doch wird es nicht von einer einheitlichen Hauptachse, sondern von einer nur scheinbaren Hauptachse durchzogen, an der jedes Stück eine Tochterachse des vorausgehenden ist. Eine solche Scheinachse bezeichnet man zum Unterschied von der echten Hauptachse (Monopodium) als Sympodium, die Verzweigung als sympodiale Verzweigung auf dichotomer Grundlage.
Übrigens kann man bei den Bärlappgewächsen alle Übergänge von dichotomer zu seitlicher Verzweigung beobachten. Viele Arten bilden bei der Gabelung eines Vegetationspunktes sofort zwei Vegetationspunkte von verschiedener Größe aus, von denen der kleinere sehr schnell gegen den größeren seitlich verschoben wird (Fig. 146).
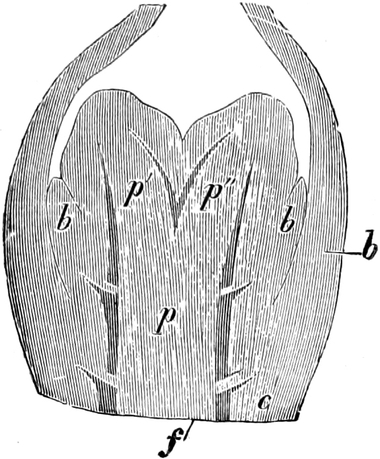
Fig. 144. Ein in zwei gleichstarke Gabeläste (p′ und p″) sich fortsetzender Sproß (p) von Lycopodium alpinum, im Längsschnitt. b Blattanlage, c Rinde, f Leitbündel. Vergr. 60. Nach HEGELMAIER.
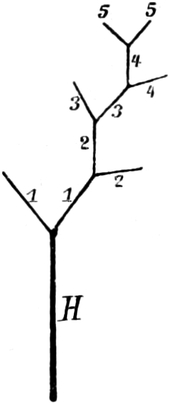
Fig. 145. Sympodium auf dichotomer Grundlage.
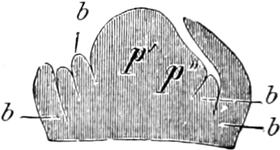
Fig. 146. Ein in zwei ungleiche Gabeläste (p′ und p″) sich teilender Sproß von Lycopodium inundatum. b Blattanlagen. Vergr. 40. Nach HEGELMAIER.
B. Die seitliche Verzweigung. a) Ort der Entstehung der Seitenknospen. An dem aus Sproßachse und Blättern bestehenden Sprosse bilden sich Seitenzweige auch bei seitlicher Verzweigung in der Regel nur an der Sproßachse oder an der untersten Basis der Blattanlagen aus, und zwar meist schon am Vegetationspunkte des Muttersprosses in akropetaler Reihenfolge als Auswüchse an seiner Peripherie, also exogen wie die Blattanlagen (Fig. 98 g). Die Orte der Seitensproßentstehung sind in der Regel fest bestimmt. Bei Pteridophyten entspringen sie oft neben den Blatthöckern, bei den Samenpflanzen aber in der Regel da, wo die Oberseite der höckerförmigen Blattanlage in das Gewebe des Vegetationspunktes übergeht, mit anderen Worten in der Blattachsel, bald mehr auf der Basis der Blattanlage, bald mehr am Stengel.
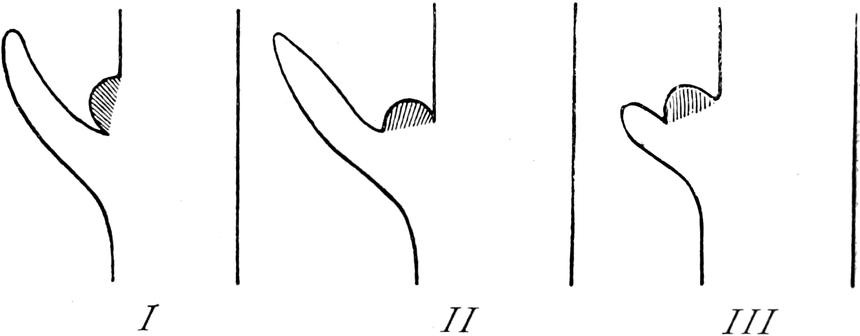
Fig. 147. Schema für die entwicklungsgeschichtlichen Beziehungen zwischen Achselsproß und Blattanlage; im Längsschnitt. Nach GOEBEL.
Die Anlage eines Seitenzweiges kann 1. aus dem Gewebe der Sproßachse dicht oberhalb der Blattanlage und nach ihr (Fig. 147 I) oder vor der Blattanlage entstehen; im letzteren Falle wölbt sich die Blattanlage aus dem basalen Gewebe an der Unterseite der Zweiganlage hervor (Fig. 147 III); 2. kann die Zweiganlage aus dem Gewebe der ganz jugendlichen Blattanlage sich bilden (Fig. 147 II). Bei dorsiventralen Sprossen von Blütenpflanzen gibt es auch extraaxilläre Seitenknospen seitlich von den Blattanlagen.
An dem Längsschnitte durch einen Vegetationspunkt in Fig. 98 sieht man die jüngste Anlage eines Seitensprosses (g) bereits in der Achsel einer der allerobersten Blattanlagen sich vorwölben. In den Achseln nächstälterer Blatthöcker sind die Sproßanlagen, da sie in akropetaler Folge entstehen, schon größer und beginnen ihrerseits Blatthöcker hervorzubringen. Solche in den Blattachseln erzeugte Knospen werden als Achsel- (oder Seiten-) Knospen, die aus ihnen hervorgehenden Sprosse als Achselsprosse bezeichnet; die Knospe, die das fortwachsende Ende eines Sprosses abschließt, heißt im Gegensatz dazu End- oder Terminalknospe. Das Blatt, in dessen Achsel eine Knospe steht, ist ihr Tragblatt, Stützblatt oder Deckblatt (Fig. 149 db). Die durch die Mittelrippe dieses Blattes und die zugehörige Mutterachse gelegte Ebene heißt die Mediane des Blattes. Im allgemeinen steht die Achselknospe in der Mediane ihres Deckblattes: nur selten ist sie seitlich dagegen verschoben. Regel ist bei den Angiospermen, daß jedes Laubblatt eine Achselknospe trägt und daß nur eine Achselknospe in der Achsel ihres Deckblattes entsteht; bei manchen Gymnospermen dagegen bilden nicht alle Blätter Achselknospen aus.
Doch gibt es auch Fälle, wo auf die erste Achselknospe die Bildung anderer, der Beiknospen, folgt. Entweder stehen diese übereinander (seriale Beiknospen), so z. B. bei Lonicera, Robinia, Gleditschia, Gymnocladus, oder nebeneinander (kollaterale Beiknospen), z. B. bei manchen Liliaceen, wie Allium- und Muscari-Arten.
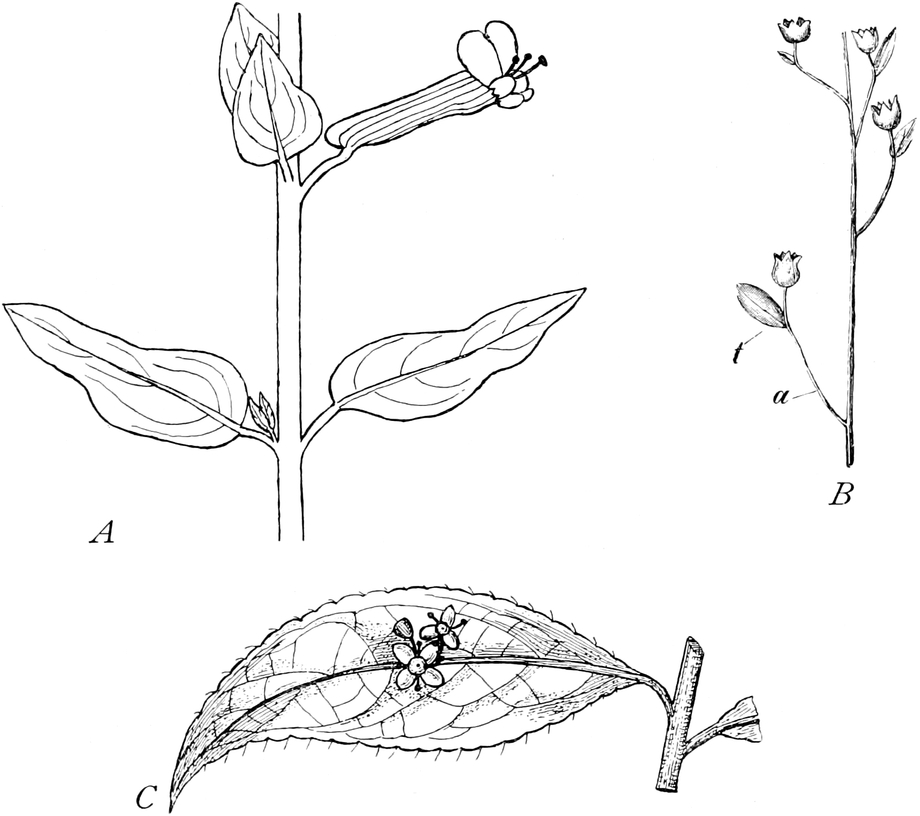
Fig. 148. A Cuphea lanceolata (Lythracee). Der (vegetative) Achselsproß in der Achsel des linken unteren Blattes nicht verschoben; der des rechten unteren Blattes (eine Blüte bildend) dem Sproß bis zu dem nächst oberen Blattpaar angewachsen. 1⁄2 nat. Größe. B Samolus Valerandi (Primulacee). Die Tragblätter t an den Achselsprossen a emporgerückt. Fruktifizierende Pflanze. Jeder Achselsproß schließt mit einer Frucht ab. Nat. Größe. Nach SCHENCK. C Blatt der ostasiatischen Cornacee Helwingia: Der kleine männliche Blütenstand mit dem Laubblatt bis zur Mitte der Spreite verwachsen. Nach SIEBOLD und ZUCCARINI.
Interkalare Wachstumsvorgänge in dem Gewebe an der Basis der Achselknospe können Verschiebungen bewirken, wodurch die ursprünglichen Beziehungen zwischen Deckblatt und Achselknospe geändert werden. So gibt es Fälle, wo die Knospen den Achseln ihrer Deckblätter durch Streckung des Gewebes der Mutterachse unterhalb der Achselknospen entrückt werden, die einzelne Knospe also viel höher am Stengel als ihr Deckblatt befestigt ist (Fig. 148 A). Das Deckblatt kann auch durch eigenes basales Wachstum unterhalb der auf ihm sitzenden Knospe diese mitnehmen, so daß der Achselsproß auf ihm sitzt (Fig. 148 C); oder es wird selbst von der sich streckenden Basis des Achselsprosses, wie in Fig. 148 B, mitgenommen und scheint ihm anzugehören.
Daß schon am Vegetationspunkte die Anlagen der Seitenzweige sichtbar werden, ist bei den Phanerogamen Regel. Treten Seitensproßanlagen erst in größerer Entfernung vom Scheitel auf, so läßt sich meist nachweisen, daß embryonale Substanz für ihre Bildung an den entsprechenden Orten aufgespart blieb.
Sproßanlagen, die in solcher Weise an vorbestimmten Stellen meist noch jugendlicher Pflanzenteile entstehen, werden als normale bezeichnet und solchen gegenübergestellt, die beliebigen anderen Stellen jüngerer oder älterer Pflanzenteile, nämlich Stämmen, Wurzeln und Blättern, entspringen und meist aus wieder teilungsfähig gewordenem Dauergewebe hervorgehen. Solche Anlagen pflegt man als adventive Bildungen zusammenzufassen. Adventivsprosse können auch inneren oder endogenen Ursprung haben; sie müssen in solchem Falle die äußeren Gewebe der Mutterpflanze durchbrechen, um nach außen zu gelangen. An Stamm- und an Wurzelteilen auftretende Adventivsprosse sind vornehmlich endogenen, die an Blättern erzeugten exogenen Ursprungs.
Adventivsprosse brechen oft als Wurzelbrut aus den Wurzeln von Kräutern (z. B. bei Convolvulus arvensis, Rumex Acetosella) oder von Sträuchern (Rubus, Rosa, Corylus) oder von Bäumen (Populus, Ulmus, Robinia) hervor, werden selbst an den Blättern mancher Gewächse, so des Schaumkrautes (Cardamine partensis), der Brunnenkresse (Nasturtium officinale), verschiedener Farnkräuter hervorgebracht. Bei anderen Pflanzen regt erst eine Verwundung des Pflanzenkörpers ihre Bildung an. So treten sie häufig als Stockausschlag an den Stümpfen gefällter Bäume auf. Gärtner verwerten vielfach Adventivknospen, die an abgeschnittenen Stammstücken, Wurzelstücken oder abgeschnittenen Blättern (Stecklingen) entstehen, um Pflanzen zu vermehren[78]. Gehen die Knospen nicht aus vorhandenen Vegetationspunkten, sondern aus Dauergewebe durch Neubildung hervor, so spricht man von Restitution (vgl. Physiologie).
Fig. 149. A Grundriß (Diagramm) und B Seitenriß einer Seitenknospe von einer Monokotyle mit 1⁄3-Blattstellung. M Mutter- (Abstammungs-) Achse, db Deckblatt daran. t Tochterachse, vb adossiertes Vorblatt daran. Verbindungslinie db–t–m Richtung der Mediane der Seitenknospe, punktierte Linie: Richtung der Transversalebene. h: was an der Tochterachse als hinten, v: was daran als vorn bezeichnet wird.
b) Blattstellungsanschluß der Seitenknospen. Will man die Stellungsverhältnisse an einem Seitenzweige beliebiger Ordnung untersuchen, so orientiert man ihn stets so, daß sein Deckblatt nach vorn (Fig. 149 db), d. h. nach dem Beobachter hin gerichtet, seine Mutterachse (m) aber nach hinten, d. h. von ihm weggewendet ist, und zugleich in der Weise, daß die Mediane des Deckblattes mit der Mediane des Beschauers zusammenfällt. Die Mediane des Deckblattes ist alsdann zugleich die Mediane des axillären Seitensprosses (vgl. Fig. 149 t). Die Ebene, die man durch die Längsachse des Seitensprosses senkrecht zu seiner Mediane legen kann, heißt die Transversalebene des Seitensprosses (vgl. Fig. 149 A). An dem Seitenzweige nennt man alles vorn (v), was zwischen seiner Transversalebene und seinem Deckblatt gelegen ist, hinten (h), was zwischen seiner Transversalebene und seinem Muttersproß gelegen ist, seitlich rechts, was sich an ihm rechts, links, was sich an ihm links von seiner Mediane befindet. Median heißt ferner alles, was am Seitenzweig in die Mediane, transversal, was in Richtung der Transversalen fällt, diagonal endlich, was schräg nach vorn oder hinten (also zwischen der Medianen und der Transversalen) an ihm liegt.
An den Seitenknospen pflegen die untersten Blätter, die direkt auf das Deckblatt folgen, unabhängig von der Anordnung der höheren Blätter eine ganz bestimmte Stellung zu dem Deckblatt und zu der Mutterachse einzunehmen. Sie vermitteln den Anschluß der Blattstellung des Seitenzweiges zu der am Muttersprosse. Bei den Monokotylen gibt es ein solches Blatt (Fig. 149 vb), bei den Dikotylen meist deren zwei von bezeichnender Stellung, die Vorblätter. Es sind häufig Nieder- oder Hochblätter. Bei den Monokotylen steht das Vorblatt median an der der Mutterachse zugekehrten oder hinteren Seite des Zweiges. Man nennt es deshalb adossiert. Häufig kommen ihm zwei als Kiele bezeichnete Seitennerven zu, dagegen fehlt der Mittelnerv (Fig. 149 A). Es dürfte durch Verwachsung zweier seitlicher Vorblätter entstanden sein[79]. Bei den Dikotylen stehen die beiden Vorblätter (α und β) an den Achselknospen gewöhnlich rechts und links transversal, worauf die anderen Blätter oft in abweichenden Stellungen folgen.
Die Seitenknospen können im übrigen die gleiche oder eine andere Blattstellung wie die Mutterachse zeigen.
Liegt schraubige Blattstellung vor, so ist die Grundspirale bei manchen Gewächsen an den Seitenknospen gleichläufig (homodrom), bei anderen gegenläufig (antidrom) zu der an den Muttersprossen.
c) Ausbildung des Sproßverzweigungssystems. Jedes Sproßsystem erhält sein Aussehen, seinen Habitus, abgesehen von der Wuchsrichtung seiner Hauptachse, durch die Zahl der Ordnungen von Seitenachsen, die zur Ausbildung gelangen, durch die Stellung der zu Seitenzweigen austreibenden Knospen an ihren Mutterachsen sowie durch die Wachstumsintensität und die Orientierung der Seitenzweige verschiedener Ordnungen im Verhältnis einerseits zu ihresgleichen und andererseits zu ihren Mutterachsen. Auch die Verschiedenheiten im Aussehen der Sproßsysteme lassen oft deutliche Beziehungen zur Lebensweise der Pflanzen erkennen.
1. Wuchsrichtung der Hauptachse des Sproßsystems. Das Sproßsystem erhält sein Gepräge zunächst durch die Wuchsrichtung der Hauptachse.
Erhebt sich die Hauptachse senkrecht vom Boden, so nennt man die Pflanze aufrecht, den Sproß orthotrop. In diesem Falle pflegt die Hauptachse bei freiem Wuchse des Systems ihre mehr oder weniger plagiotropen und dorsiventralen Seitenzweige in radiärer Verteilung auszubilden. Wächst die Hauptachse schräg oder horizontal, also plagiotrop, so sind die Seitenzweige daran meist dorsiventralsymmetrisch angeordnet; bleibt die Hauptachse samt den Seitenzweigen auf der Oberfläche des Bodens oder horizontal unter dem Boden, ohne sich zu erheben, so entstehen kriechende Pflanzen, deren Sprosse meist, und zwar auf ihren Unterseiten, bewurzelt sind. Bei kriechenden Pflanzen pflegen die Seitenzweige den Flanken der Sprosse zu entspringen; erheben sich solche Seitenzweige senkrecht vom Boden, so verhalten sie sich hinsichtlich ihrer Verzweigung oft wie aufrechte Pflanzen.
2. Sproßfolge. Ist schon der Vegetationspunkt der Hauptachse (d. h. also der Keimlingsachse) nach entsprechender Erstarkung der Pflanze zur Bildung der Fortpflanzungsorgane befähigt, so wird die Pflanze einachsig (haplokaulisch) genannt. Einachsig ist der Mohn, der schon seinen ersten, aus dem Keim hervorgegangenen Sproß mit einer Blüte abschließt. Meist kommt aber erst Achsen zweiter, dritter, vierter oder n-ter Ordnung die Fähigkeit zu, eine Blüte auszubilden. Alsdann ist die Pflanze zweiachsig (diplokaulisch), dreiachsig (triplokaulisch) oder n-achsig. Eine dreiachsige Pflanze ist der große Wegerich, Plantago major, der an seiner ersten Achse nach den Niederblättern nur Laubblätter, an den Achsen zweiter Ordnung nur Hochblätter trägt und aus den Achseln der letzteren die mit Blüten abschließenden Achsen dritter Ordnung erzeugt. An unseren Bäumen sind erst Sprosse n-ter Ordnung befähigt, Blüten zu bilden. In den meisten Verzweigungssystemen gibt es viele Seitensprosse, die sich nicht bis zu den blütenbildenden Ordnungen weiter verzweigen. Entweder treten sie als Bereicherungssprosse auf, so bei vielen einjährigen Pflanzen, oder sie entfalten sich als Erneuerungs- oder Innovationssprosse alljährlich am Pflanzenstock, wie bei den mehrjährigen Gewächsen. So pflegt in der Sproßordnung verzweigter Pflanzen eine Arbeitsteilung zwischen den Seitensprossen vorzukommen, die sich oft auch in der Stellung und in der Ausgestaltung der Seitensprosse zu erkennen gibt; die Seitensprosse sehen verschieden aus, je nachdem sie vornehmlich im Dienste der Ernährung, der Speicherung oder der Fortpflanzung stehen.
3. Stellungen der austreibenden Knospen. Nur selten treiben sämtliche Seitenknospen, die an einer Mutterachse entstanden sind, sofort aus und werden zu Seitensprossen; das ist z. B. bei Kräutern der Fall. Regel ist indes, daß viel mehr Seitenknospen angelegt werden, als zur Entfaltung kommen, daß also nur ein ganz kleiner Teil zu Sprossen auswächst. Die übrigen bleiben ruhende, schlafende Augen oder verkümmern frühzeitig. Entfaltung aller Knospen wäre für die Pflanze eine ganz unnötige, ja sogar schädliche Materialverschwendung. Die Zweige würden sich gegenseitig so stark beschatten, daß ein Teil absterben müßte.
Fast jeder Baum besitzt, namentlich im unteren Teile seiner Jahrestriebe, solche „schlummernde Augen“, die kürzere oder längere Zeit entwicklungsfähig bleiben und zur Entfaltung nur unter besonderen Bedingungen gelangen. Bei der Eiche, Rotbuche u. a. können schlummernde Knospen bis 100 Jahre alt werden. Vielfach sind es daher Sprosse aus solchen Knospen und nicht Adventivsprosse, die aus alten Stämmen hervorbrechen.
Das Austreiben der Seitenknospen kann regellos stattfinden oder bestimmten Regeln unterworfen sein, akropetal oder basipetal erfolgen. An reich verzweigten Sproßsystemen sind die peripheren bevorzugt; denn hier besteht die größte Aussicht, die Blätter in günstiges Licht zu bringen.
Fast alle einheimischen Bäume beschränken sich während einer Vegetationsperiode darauf, die im Frühling aus den Winterknospen hervorgegangenen Zweige an ihren Spitzen zu verlängern und ruhende Knospen an diesen Ästen auszubilden. Meist erst bei Beginn einer neuen Wuchsperiode lassen sie alsdann auf einmal Seitenzweige aus den obersten Knospen, die im vergangenen Jahre an den Ästen angelegt wurden, hervorgehen; etwa in einem echten oder Scheinquirl (Araukarie, Tanne) oder meist so, daß die obersten Seitenknospen zu Langtrieben, einige darunter befindliche zu Kurztrieben (Birne, Apfel) werden. Bei anderen, namentlich aufrechten Sprossen treibt von allen daran angelegten Knospen in streng gesetzmäßiger Weise jede zweite oder dritte oder vierte usw. aus und zwar so, daß die austreibenden Zweige seitlich oder longitudinal gleichen Abstand voneinander erhalten.
Die Verteilung der austreibenden Knospen, ob wechselständig oder quirlständig, bewirkt Unterschiede im Aussehen der Verzweigungssysteme. Bei gegenständiger Stellung der Knospen kommt eine Art unechte Gabelverzweigung zustande, wie bei der Roßkastanie und dem Flieder.
4. Richtung und Wachstumsintensität der Seitenzweige im Verhältnis zu ihresgleichen. Die seitlichen Winkel, die an orthotropen Ästen die Längsachsen benachbarter Seitenzweige gleicher Ordnung miteinander bilden, können bei einer Pflanzenart ziemlich beständig sein (z. B. bei der Araukarie, Tanne).
Dagegen ist die Wachstumsintensität der Seitenachsen an einer Mutterachse oft recht verschieden. Oft bildet sich nämlich nur ein Teil der Zweige als Langtriebe, der Rest zu gestauchten Kurztrieben aus, vielfach als Ausdruck einer Arbeitsteilung zwischen den Seitenzweigen. Die Kurztriebe haben meist kürzere Lebensdauer, pflegen sich nicht zu verzweigen und nehmen bei Bäumen am Aufbau des bleibenden Gerüstes keinen Anteil: so bei der Lärche, die die Kurztriebe in Gestalt dichter Nadelbüschel an ihren älteren Langtrieben trägt, und bei den Kiefern.
5. Richtung und Wachstumsintensität der Seitenzweige im Verhältnis zu ihren Mutterachsen. Verschiedene Arten seitlicher Verzweigung. Auch die Neigungswinkel der Seitenachsen zu ihrer Mutterachse pflegen im allgemeinen bei einer Spezies ziemlich konstant, also für die Art bezeichnend zu sein. Sie sind meist kleiner, selten größer als 90°.
Die Seitenachsen, die an einer Mutterachse entstanden sind, können weniger intensiv als diese oder ebenso schnell, oft aber auch viel schneller als die Mutterachse wachsen. Im letzten Fall sind sie also gegenüber der Mutterachse gefördert. Die Mutterachse kann sogar nach der Bildung von Seitenzweigen ihr Wachstum ganz einstellen und einem oder mehreren Seitenzweigen die Ausbildung neuer Seitenzweige, die Fortsetzung der Verzweigung überlassen. Es leuchtet ein, daß die entstehenden Verzweigungssysteme durch solche Unterschiede im Wachstum der Tochter- und Mutterachsen völlig verschiedenes Aussehen erhalten müssen. Diese Differenzen haben Anlaß zur Unterscheidung verschiedener Arten seitlicher Verzweigung gegeben, deren Kenntnis für das Verständnis des morphologischen Aufbaues der höheren Pflanzen unerläßlich ist. Besonders leicht kann man ihre Unterschiede an den Blütenständen oder Infloreszenzen der Samenpflanzen beobachten (vgl. speziellen Teil). Bezeichnend für viele Infloreszenzen ist nämlich, daß die Achselknospen aller Hochblätter austreiben; dadurch werden die Infloreszenzen im Gegensatze zu den vegetativen Sproßsystemen zu außerordentlich dichten Zweigsystemen.
a) Wächst die Hauptachse stärker als die Seitenachsen I. Ordnung, diese stärker als die an ihnen entstehenden Seitenzweige II. Ordnung usw., oder wachsen die jeweiligen Mutterachsen ebenso stark wie ihre Tochterachsen, so spricht man von razemöser Verzweigung. Im ersteren Falle geht eine echte Hauptachse (ein Monopodium) durch das ganze Verzweigungssystem hindurch (vgl. das auch hierfür gültige Schema, Fig. 82 b). Diese typisch monopodiale Verzweigung ist z. B. bei der Tanne und anderen Koniferen mit pyramidenförmigen Gesamtumrissen ausgebildet: der radiäre Hauptsproß wächst unter dem Einflusse der Schwerkraft (vgl. S. 299) senkrecht nach oben, orthotrop; die meist dorsiventralen Seitenzweige I. Ordnung strahlen in horizontaler oder schräger Richtung vom Hauptsprosse allseitig aus. Wachsen auch die Seitenzweige I. Ordnung steil aufrecht, wie z. B. bei der Zypresse und bei vielen Sträuchern, so ist oft kein deutlicher Längenunterschied zwischen der Hauptachse und den Seitenachsen I. Ordnung vorhanden. Das Verzweigungssystem hat in diesem Falle ovalen oder runden Umriß.
b) Erlischt das Wachstum in den Mutterachsen rasch und geht es auf die Tochtersprosse über, so liegen zymöse Verzweigungen vor. Sie sehen verschieden aus, je nachdem mehrere gleichmäßig wachsende Seitenachsen gleicher Ordnung oder nur eine Seitenachse das Verzweigungssystem fortsetzen. Im letzteren Falle ist eine scheinbare Hauptachse, ein Sympodium, ausgebildet.
Bei vielen zymösen Verzweigungen wachsen die jeweiligen Mutterachsen nicht nur langsamer als die Tochterachsen, sondern ihre Spitzen sterben sogar ab oder werden abgeworfen, wie bei vielen unserer Laubbäume, z. B. den Weiden, der Linde.
I. Setzen mehr als zwei Seitenzweige gleicher Ordnung die Verzweigung fort, so spricht man von Pleiochasium. Diese Seitenzweige pflegen dem oberen Ende ihres Muttersprosses genähert zu sein und allseits, bei manchen Pflanzen quirlartig, schräg nach außen in den Raum zu strahlen (z. B. Verzweigung von Euphorbia).
II. Setzen zwei Seitenzweige gleicher Ordnung, die in spitzen oder rechten Winkeln einander gegenüber zu stehen pflegen, die Verzweigung fort, so entsteht ein Dichasium. Schematisch zeigt es Fig. 150 (vgl. dazu die dichasiale Infloreszenz Fig. 536). Die Seitenzweige breiten sich aber nicht, wie in dem Schema, in einer Ebene aus, sondern allseits im Raume. Dies wird dadurch erreicht, daß die Verzweigungsebenen in den aufeinanderfolgenden Seitenzweigordnungen nicht zusammenfallen, sondern rechte Winkel miteinander bilden. So kann nur der Grundriß (Fig. 152 E) Aufschluß über die wahre Anordnung der Zweige des Sproßsystems geben. Ein solches Verzweigungssystem, das z. B. auch bei der auf unseren Bäumen wachsenden Mistel vorkommt, kann den Anschein einer Dichotomie erwecken.
III. Setzt immer bloß ein Seitenzweig die Verzweigung fort, so liegt ein Monochasium vor. Oft stellt sich dieser Seitenzweig in die Verlängerung seines Muttersprosses, indem er dessen Spitze zur Seite drängt (Fig. 151). So entsteht ähnlich, wie es bei der dichotomen Verzweigung des Sprosses der Fall sein kann (S. 104 ff.), ein Verzweigungssystem mit einer Scheinachse (Sympodium), die sich aus Seitensprossen verschiedener Ordnungen zusammensetzt. Ein solches Verzweigungssystem kann einem monopodialen sehr ähnlich sehen, namentlich wenn die Scheinachse, wie so oft, senkrecht emporwächst, die im Wachstume zurückbleibenden Enden der Zweige, die die Scheinachse zusammensetzen, dagegen Seitenzweigen ähnlich sich horizontal oder schräg stellen. Von Seitenzweigen unterscheiden sich solche Zweige aber stets dadurch, daß ein Deckblatt an ihrer Basis fehlt, dafür aber ein Blatt ihnen gegenüber am Sympodium befestigt ist, nämlich das Deckblatt des geförderten Tochtersprosses (vgl. dazu Fig. 151). Nicht selten ist das Sympodium weiter sympodial verzweigt. Stämme und Äste vieler unserer Laubhölzer sind solche Sympodien, so bei der Linde oder der Rotbuche. An ihrem Stamme und an ihren Ästen ist aber von dem sympodialen Aufbaue nichts mehr zu erkennen. Dauernd erkennbar bleibt dagegen der sympodiale Aufbau vielfach an unterirdischen Stengelteilen, so an denen von Polygonatum multiflorum (Fig. 143). Jedes Jahr erhebt sich die jeweilige Endknospe dieses unterirdischen Stammes als Sproß über den Boden, während eine Achselknospe das Rhizom im Boden fortsetzt.
Fig. 150. Schema des Dichasiums. H Keimlingsachse, 1, 2, 3 Tochterachsen 1., 2., 3. Ordnung.
Fig. 151. Schema des Monochasiums vgl. Fig. 152.
Je nach der Stellung der Seitensprosse verschiedener Ordnung zueinander entstehen monochasiale Verzweigungssysteme von sehr verschiedenem und sehr bezeichnendem Aufbaue. Sehr oft setzt sich die Verzweigung schon aus der Achsel eines Vorblattes fort.
A. Entweder fallen die Medianen aller Seitensprosse in eine und dieselbe Ebene, nämlich in die Medianebene des Seitensprosses I. Ordnung; sie stehen also median.
α) Alle aufeinanderfolgenden Seitenzweige fallen median nach vorn von ihren Mutterachsen, d. h. zwischen die Mutterachse und das Deckblatt der Mutterachse (vgl. S. 107 ff.), in der Seitenansicht des Verzweigungssystems also auf ein und dieselbe Seite: Sichel (Fig. 152 C, D).
β) Die aufeinanderfolgenden Seitenzweige fallen sämtlich median nach hinten von ihren Mutterachsen (vgl. S. 107 ff.), in der Seitenansicht also abwechselnd nach links und rechts: Fächel (Fig. 152 A, B).
B. Die Mediane jedes Seitensprosses (I., II., III. usw. Ordnung) steht immer transversal, d. h. seitlich rechts oder links zur Mediane des Deckblattes für seinen Muttersproß. Solche Verzweigungssysteme lassen sich natürlich nur in Grundrissen veranschaulichen.
α) Die aufeinanderfolgenden Seitenachsen stehen stets nach der gleichen Seite transversal zu den Medianen ihrer Muttersproßdeckblätter, entweder nach rechts oder nach links: Schraubel (Fig. 152 F).
β) Die aufeinanderfolgenden Seitenachsen stehen abwechselnd nach rechts und links transversal zu den Medianen ihrer jeweiligen Muttersproßdeckblätter: Wickel (Fig. 152 G).
Schraubel und Wickel lassen sich aus dem Grundriß des Dichasiums leicht ableiten (Fig. 152 E) und dadurch in ihrer Eigenart verstehen.
Fig. 152. A Fächel im Seitenriß, B in Grundansicht. C Sichel im Seitenriß, D in Grundansicht. E Dichasium in Grundansicht und Ableitung der Wickel (blaue Linie) und Schraubel (rote Linie) daraus. F Grundansicht der Schraubel. G Grundansicht der Wickel. 1–9 Ordnungen aufeinanderfolgender Tochterachsen. (A–D nach EICHLER, das übrige nach KARSTEN, verändert.) Um das Verständnis zu erleichtern, sind in A–D und F, G die aufeinanderfolgenden Tochterachsen je nächst niederer Ordnungen mit verschiedenen Farben wiedergegeben. Das an jeder Tochterachse befestigte Deckblatt hat die gleiche Farbe erhalten wie diese Achse, an der es entstanden ist.
In einem Sproßsysteme sind nicht selten verschiedene Verzweigungsarten miteinander verbunden. So können etwa auf dem razemös verzweigten Keimsproß zymös verzweigte Seitensprosse folgen. In besonders mannigfaltiger und wechselnder Verbindung sind die verschiedenen Verzweigungsarten bei den Blütenständen vereinigt (vgl. speziellen Teil).
b) Die Wurzel[80].
Den Wurzeln, die meist in der Erde (Erdwurzeln), seltener in der Luft (Luftwurzeln) leben, fehlen immer die Blätter. Dadurch haben sie ein ganz anderes Aussehen als die Sprosse, selbst als die Erdsprosse. Ihre Aufgabe ist, die Pflanze im Boden zu befestigen, aus dem Boden Wasser und Bodensalze aufzunehmen und zum Sproßsystem hinzuleiten. Auch ihre Funktionen sind also völlig andere als bei den meisten Sprossen, die hauptsächlich der Kohlensäureassimilation dienen.
1. Vegetationspunkt. Die Wurzel verlängert sich an der Spitze. Sie zeigt Scheitelwachstum mittels eines kegelförmigen Vegetationspunktes. Der Vegetationskegel bedarf für seine dünnwandigen embryonalen Zellen eines besonderen Schutzes; denn er wird bei dem Wachstum der Wurzel wie ein Nagel zwischen die scharfkantigen Bodenpartikelchen vorwärts getrieben. Dieser Schutz wird von einem besonderen Organe aus parenchymatischen Dauerzellen, der Wurzelhaube oder Kalyptra, übernommen, die die Spitze der Wurzel wie ein Däumling den Finger umhüllt, so daß der eigentliche Vegetationspunkt im Innern des Gewebes der Wurzelspitze, also interkalar, liegt. Die Verschleimung der äußeren Zellmembranen der Haube erleichtert zugleich bei den Erdwurzeln das Vorwärtsdringen im Boden. Die Wurzelhaube sieht man meist erst auf medianen Längsschnitten durch die Wurzelspitzen (Fig. 153, 154); doch gibt es auch Fälle (Pandanus), wo man sie schon an der unversehrten Wurzel als eine ihren Scheitel deckende Kappe wahrnehmen kann.
Fig. 153. Medianer Längsschnitt durch die Wurzel des Farnes Pteridium creticum. t Scheitelzelle, k Haubeninitiale, kn Wurzelhaube. Vergr. 240. Nach STRASBURGER.
Die besonders auffälligen Kappen an den Enden der Wasserwurzeln unserer Wasserlinsen (Lemna-Arten) und mancher Hydrocharitaceen gehören dagegen ihrem Ursprung nach nicht zur Wurzel; sie bilden sich vielmehr aus einer die Wurzelanlage umgebenden Hülle, etwa aus Sproßgewebe, und werden demgemäß als Wurzeltaschen bezeichnet. Wurzeln ohne Wurzelhaube sind eine sehr seltene Erscheinung; sie kommen z. B. vor bei den eben erwähnten Wasserlinsen, bei denen die Wurzeltasche die Funktionen der Wurzelhaube übernimmt. Ebenso fehlt eine Wurzelhaube der rasch absterbenden Wurzel des parasitisch lebenden Teufelszwirns (vgl. S. 162).
In Zeiten der Ruhe, wo die Erdwurzeln nicht weiterwachsen, werden die Wurzelhauben verkorkt; ihre parenchymatischen Zellen wandeln sich in Kutisgewebe um, das die Wurzelspitzen wirksam nach außen abschließt.[81]
Der Vegetationspunkt der Wurzel wird, wie schon gesagt, aus Meristemzellen aufgebaut, von denen sich die basalwärts gelegenen in Dauerzellen des Wurzelkörpers, die an der Spitze in die Dauerzellen der Wurzelhaube umwandeln.
Bei den meisten Pteridophyten haben die Wurzeln wie die Sprosse eine dreischneidige Scheitelzelle (t Fig. 153) von der Gestalt einer dreiseitigen Pyramide.
Außer den Segmenten, die sie parallel zu ihren drei inneren Seitenwänden nach dem Wurzelkörper hin abgibt, bildet sie solche auch nach außen (k). Letztere bauen die Wurzelhaube auf, indem sie sich weiter teilen.
Die Vegetationspunkte der Phanerogamenwurzeln besitzen dagegen keine Scheitelzellen. Sie bestehen aus gleichwertigen embryonalen Zellen, die oft in regelmäßigen Schichten angeordnet sind.
Als Beispiel sei auf den Vegetationskegel einer Gramineen-Wurzel (Fig. 154) hingewiesen: Die Meristemschichten, die das Dauergewebe des Wurzelkörpers liefern, sondern sich hier in eine äußere Zellschicht, das Dermatogen (d), in mehrere zentrale Schichten, die einen Gewebestrang für sich bilden und sämtlich oder teilweise in den Zentralzylinder der Wurzel übergehen, das Plerom (pl), und in mehrere zwischen Dermatogen und Plerom gelegene Schichten, das Periblem. Die Schichten des Dermatogens (d Fig. 154) und Periblems (pr) vereinigen sich am Scheitel zu einer einzigen Zellschicht. Außerhalb davon liegt die Zellschicht, die die Wurzelhaube bildet, das Kalyptrogen (k).
Bei vielen anderen Wurzeln (bei der Mehrzahl der Dikotylen) wird dagegen die Wurzelhaube durch Vermehrung der Schichten des Dermatogens gebildet, das auch an der Spitze des Scheitels vom Periblem getrennt sein kann; bei manchen nimmt auch das Periblem, ja unter Umständen selbst das Plerom an der Bildung der Haube teil, so bei vielen Leguminosen und bei den Gymnospermen. Bei diesen sind Periblem, Dermatogen und Kalyptrogen am Scheitel überhaupt nicht gesondert; der Pleromzylinder schließt aber fast stets mit deutlich abgegrenzten Initialen ab.
Fig. 154. Medianer Längsschnitt durch die Wurzelspitze der Gerste. k Kalyptrogen, d Dermatogen, c dessen verdickte Außenwand, pr Periblem, pl Plerom, en Endodermis, i mit Luft sich füllende Interzellularen, a Zellreihe, aus der das zentrale Gefäß hervorgehen wird, r abgestoßene Zellen der Wurzelhaube, s große, leicht bewegliche Stärkekörner in den Haubenzellen. Vergr. 180. Nach STRASBURGER u. KOERNICKE.
2. Äußerer Bau des Wurzelkörpers. Die embryonalen Zellen wandeln sich an der Basis des Vegetationskegels unter starker Größenzunahme allmählich in Dauerzellen um. Hiermit geht eine ausgiebige Verlängerung des Wurzelkörpers Hand in Hand. Durch dieses Streckungswachstum, das also erst hinter dem Vegetationskegel einsetzt und bei den Erdwurzeln im Gegensatze zu den Luftsprossen auf eine sehr kurze, höchstens 5–10 mm lange Zone dicht hinter dem Vegetationspunkt beschränkt ist, wird die Wurzel zu einem zylindrischen, fadenförmigen, farblosen Gebilde.
Bei Luftwurzeln kann die Streckungszone aber viele Zentimeter lang werden. Ihre geringe Länge bei den Erdwurzeln hängt offenbar mit der Lebensweise dieser Wurzeln im Boden zusammen.
In einiger Entfernung von der Wurzelspitze, etwa da, wo das Streckungswachstum erlischt, entstehen an den Erdwurzeln wichtige Anhangsgebilde der Wurzeln, die Wurzelhaare[82] (r in Fig. 155 und Fig. 51): lokale schlauchförmige, sehr dünnwandige und schleimüberzogene Ausstülpungen der lebenden Epidermiszellen. Besonders an Keimpflanzen, die in feuchtem Raume kultiviert werden, z. B. vom Weizen, kann man sie in ungeheuer großer Menge (bei Zea mays etwa 420 pro qmm) mit bloßem Auge als zarten Flaum auf der Oberfläche der Wurzeln gut erkennen. Ihre Länge schwankt je nach den Pflanzenarten zwischen 0,15 und 8 mm. Sie vergrößern in sehr wirksamer Weise die Oberfläche der Wurzeln (bei Pisum z. B. um das zwölffache). Diese Haare dringen zwischen die Bodenpartikelchen ein, ja verwachsen sogar mit ihnen. Im Boden bewahren sie infolgedessen nicht Zylinderform, wie in feuchter Luft, sind vielmehr hin und her gekrümmt und an der Spitze abgeplattet, keulig oder lappig (Fig. 237). Sie dienen der Wasser- und Bodensalzaufnahme, haben aber nur wenige Tage Lebensdauer. In dem Maße, wie spitzenwärts neue Wurzelhaare hinzukommen, sterben die älteren ab, so daß immer nur ein begrenzter Teil der jungen Wurzel (einige Zenti- oder Millimeter) von ihnen bedeckt ist. Der ältere kahle Teil dient lediglich noch der Leitung, nicht mehr der Aufnahme von Wasser. An ihm ist sehr häufig eine Querrunzelung der Oberfläche erkennbar, die durch eine nachträgliche Kontraktion dieser Wurzelteile bedingt wird. Durch diese Kontraktion verkürzt und spannt sich die Wurzel wie ein gespannter Bindfaden straff und verankert den Sproß wesentlich fester im Boden (vgl. Fig. 205, 6).
Manchen Pflanzen fehlen die Wurzelhaare, vor allem solchen, die besonders leicht Wasser aufnehmen können, so vielen Wasser- und Sumpfpflanzen. Die Wurzeln mancher Wasserpflanzen, z. B. von Nuphar luteum, bilden aber dann Haare, wenn sie in den Boden eindringen; die Wurzeln von Sumpfpflanzen, wie Carex paludosa, wenn es an Wasser fehlt. Bei gewissen Wasserpflanzen, z. B. bei Hydrocharis, tragen aber auch die Wasserwurzeln reichlich Wurzelhaare.
Fig. 155. Keimpflanze der Hainbuche (Carpinus betulus). h Hypokotyl, c Kotyledonen, hw Hauptwurzel, sw Seitenwurzeln, r Wurzelhaare, e Epikotyl, l und l′ Laubblätter. Nat. Gr. Nach NOLL.
3. Primärer innerer Bau der Wurzel. Haben sich die embryonalen Zellen des Vegetationspunktes in Dauerzellen umgewandelt, so sind in der Wurzel die gleichen Gewebearten wie in der Sproßachse, und zwar auch meist in radiär symmetrischer Anordnung gesondert.
Der äußere Abschluß wird an jüngeren Teilen der Wurzel durch die dünnwandige Epidermis gebildet, die samt ihren Anhangsgebilden, den Wurzelhaaren, der Stoffaufnahme dient. Bezeichnend für sie ist der Mangel der Spaltöffnungen und der Kutikula. Die Epidermis der Wurzel stirbt aber mit den Wurzelhaaren bald ab. Wo letztere verschwunden sind, nimmt ein Kutisgewebe, nämlich die äußerste Rindenschicht, deren Zellwände mehr oder weniger verkorken, als Exodermis (Fig. 156 cx) die Oberfläche ein[83].
In einer solchen Exodermis werden oft unverkorkte Zellen ausgespart, die als Durchlaßzellen gelten. Sie sind in bestimmten Fällen regelmäßig zwischen den verkorkten verteilt und kleiner als diese.
Das übrige Gewebe kann man wieder in Rinde und Zentralzylinder einteilen.
Die Rinde der Erdwurzeln wird von farblosem Gewebe gebildet, das fast immer parenchymatisch ist und nur in den inneren Teilen Interzellularen enthält. In manchen Fällen erweitern sich die letzteren zu Luftlücken oder Luftkanälen. In der Rinde vieler Luftwurzeln kommt dagegen Chlorophyll vor. Manchmal werden Festigungsgewebe ausgebildet (Fig. 159, 2), die die Epidermis oder Exodermis verstärken und die Wurzeln biegungs- und druckfest machen. Die innerste Rindenschicht pflegt eine Endodermis[84] zu sein (Fig. 156 e, 157 e, 158 S, 160 s), die eine scharfe Grenze zwischen Rinde und Zentralzylinder zieht. Sie besteht aus rechteckig prismatischen, gewöhnlich etwas gestreckten Zellen, die auf Querschnitten die dunklen CASPARYschen Punkte in den radialen Wänden zeigen. Durch diese Membranstreifen (vgl. S. 49) scheint ein gewisser Abschluß des Zentralzylinders gegen die primäre Rinde erreicht zu werden; die tangentialen Wände der jungen Endodermis aber erlauben dem Wasser den Durchtritt aus der Rinde in den Zentralzylinder und umgekehrt.
Fig. 156. Querschnitt durch eine Wurzel der Küchenzwiebel (Allium Cepa), ep Reste der Epidermis, ex Exodermis, c Rinde, e Endodermis, cc Zentralzylinder. Vergr. 45. Nach M. KOERNICKE.
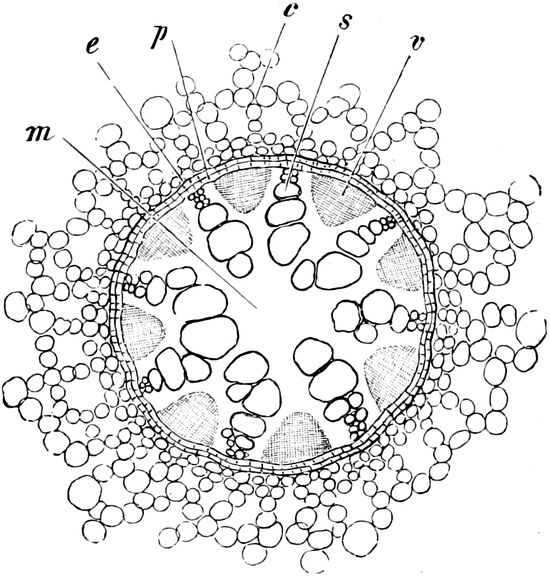
Fig. 157. Querschnitt durch die Wurzel von Acorus Calamus. m Mark, s Gefäßstränge, v Siebstränge, p Perizykel, e Endodermis, c Rinde. Vergr. 90. Nach STRASBURGER.
In etwas älteren Wurzelteilen werden die Endodermiszellen durch Suberinlamellen verkorkt und, bei vielen Monokotylen, außerdem durch tertiäre Verdickungsschichten meist einseitig nach dem Zentralzylinder zu verdickt (Fig. 160). Treten solche Veränderungen frühzeitig auf, so bleiben bestimmte, vor den Gefäßsträngen des Leitbündels gelegene Endodermiszellen, die Durchlaßzellen, davon ausgeschlossen (d Fig. 160).
Die äußerste parenchymatische Zellschicht des Zentralzylinders der Wurzeln (Fig. 157 p, 158 pc, 160 p), also die Schicht direkt unter der Endodermis, bildet den Perizykel, der meist einschichtig ist, in seltenen Fällen auch fehlen kann. Im Zentralzylinder verlaufen in gerader Längsrichtung die Leitungsbahnen, die als Gefäß- und als Siebstränge ausgebildet sind und bei allen Wurzeln ein radiales Leitbündel[61] bilden (vgl. S. 85). Die Gefäß- und Siebstränge sind also in das übrige Gewebe des Zentralzylinders radial nebeneinander und zwar so eingebettet, daß sie voneinander durch eine bis mehrere Zellschichten (meist Leitparenchym) getrennt bleiben. Die plattenförmigen Gefäßstränge sind in der Wurzel umgekehrt wie in den kollateralen Leitbündeln des Stengels orientiert: im Stengel haben sie ihre engsten Gefäße innen, die weitesten außen, in der Wurzel dagegen die weitesten Gefäße innen, die engsten am Umkreis des Leitbündels. Von außen nach innen folgen also Ring-, Schrauben-, Netz- und Tüpfelgefäße aufeinander. Auch die Phloëmprimanen liegen peripher, am Außenrande der Siebstränge, die rundlichen Querschnitt haben. Nach der Zahl der vorhandenen Xylemstränge wird die Wurzel als diarch, triarch usw., schließlich als polyarch bezeichnet. So ist die in Fig. 157 dargestellte Wurzel oktarch, die der Fig. 160 pentarch. Die Gefäßstränge stoßen in der Mitte der Wurzel entweder zusammen, wie in Fig. 158 u. 160; oder es ist dort, wie die Fig. 157 zeigt, ein zentraler Strang aus Parenchym oder Sklerenchym, oft auch aus beidem vorhanden. Die meisten Wurzeln werden vor allem auf Zugfestigkeit in Anspruch genommen. So ist das Festigungsgewebe hauptsächlich in das Zentrum der Wurzel verlegt, wo es durch seine geschlossene Masse die Wurzeln am besten vor Zerreißung schützt (Fig. 159).
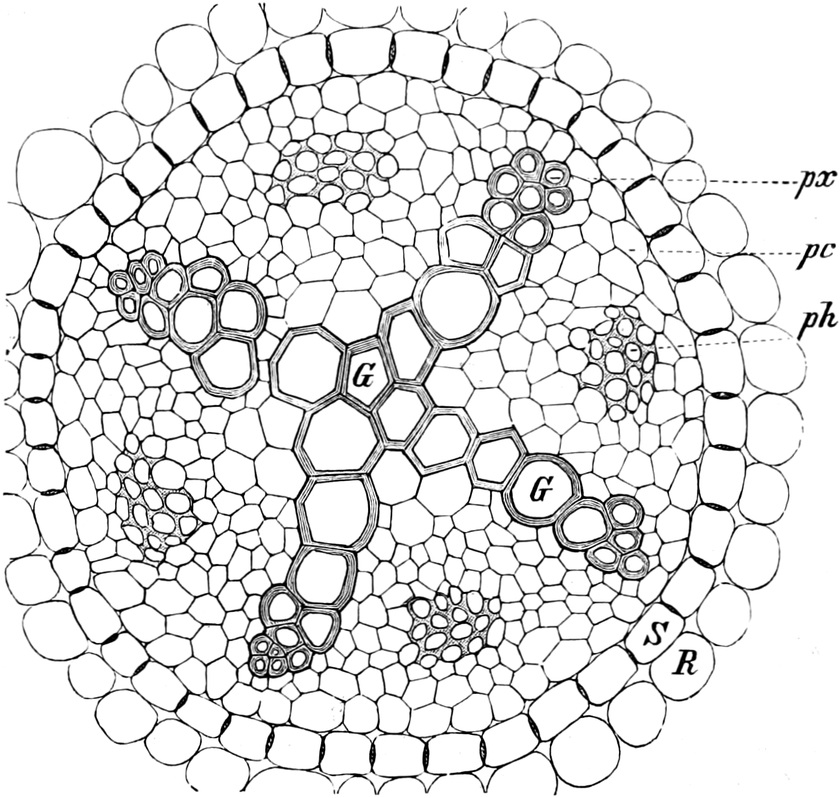
Fig. 158. Querschnitt durch das radiale Leitbündel der Wurzel von Ranunculus acer. R Rindenparenchym, S Endodermis, pc Perizykel, ph Phloëm, px Xylemprimanen, G Tüpfelgefäße. Vergr. 200. ROTHERT frei nach DIPPEL.
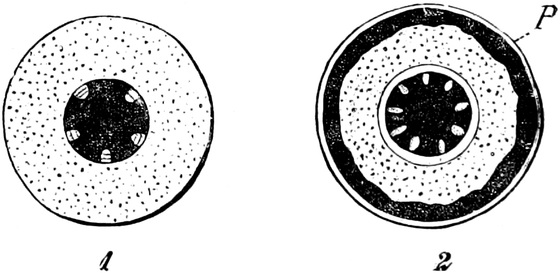
Fig. 159. Mechanisches Gewebe der Wurzel. 1 Zentral angeordnet für Zugfestigung. 2 Neben dem zentralen Strang ein peripherer Mantel P für Druck- und Biegungsfestigung (Stützwurzel). Nach NOLL.
Für ein Organ, das zugfest sein soll, ist es an und für sich ziemlich gleichgültig, wo auf dem Querschnitt die Festigungsmassen liegen. Immerhin ist ihre Vereinigung im Zentrum zu einem einzigen Strang jeder anderen Anordnung überlegen. Wären nämlich statt dessen z. B. viele entsprechend dünnere Stränge an der Peripherie verteilt, so würden einzelne bei einem einseitigen Zuge der Gefahr der Zerreißung ausgesetzt sein.
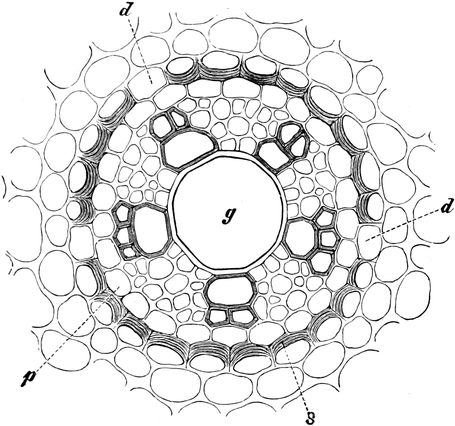
Fig. 160. Radiales Leitbündel der Wurzel von Allium ascalonicum. s Endodermis mit verdickten Innenwänden, d Durchlaßzellen, p Perizykel, g großes zentrales Gefäß. ROTHERT nach HABERLANDT.
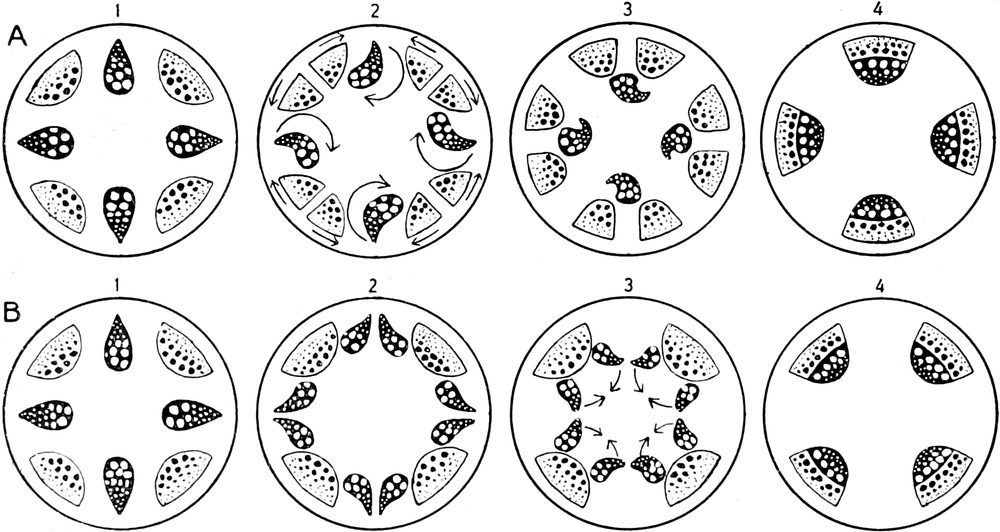
Fig. 161. Übergang des radialen Wurzelleitbündels in die kollateralen Stengelbündel, schematisiert: nach Beschreibungen VAN TIEGHEMs und CHAUVEAUDs. Weiß: Rinde und Mark. Schwarz punktiert: Phloëm. Weiß punktiert auf Schwarz: Xylem. Weitere Erklärung im Text.
Es bleibt noch zu erörtern, wie die Sieb- und Gefäßstränge des radialen Wurzelbündels in die Sieb- und Gefäßstränge der anders gebauten Stengelbündel übergehen[85]. Das geschieht meist an der Grenze der Keimwurzel und des Keimstengels; es sei nur für den häufigsten Fall, für Pflanzen mit kollateralen Stengelbündeln, kurz beschrieben. Das Wesentliche dieses Überganges besteht darin, daß die Gefäßstränge des radialen Wurzelbündels sich in der Übergangszone je um ihre eigene Längsachse, und zwar um annähernd 180° drehen (vgl. Fig. 161); dadurch werden aus den exarchen Gefäßsträngen der Wurzel (vgl. S. 90) die endarchen Stränge des Stengels. Die ältesten Xylemprimanen der Wurzel beteiligen sich nach CHAUVEAUD an dieser Bewegung nicht, sondern werden aufgelöst. Aus dem radialen Wurzelbündel werden nun dadurch eine Anzahl kollateraler Bündel gebildet, daß die Sieb- und Gefäßstränge, die in der Wurzel nebeneinander liegen, sich gegeneinander verlagern. Diese Verlagerung vollzieht sich bei den verschiedenen Arten verschieden. Zwei Haupttypen lassen sich nach VAN TIEGHEM unterscheiden: 1. Die Gefäßstränge verlaufen, abgesehen von ihrer Drehung, geradlinig aus der Wurzel in den Stengel; die Siebstränge der Wurzel aber spalten sich durch einen radialen Spalt je in zwei Hälften; die Hälften weichen tangential auseinander und legen sich vor die benachbarten gedrehten Gefäßteile, wo sie sich je mit der Hälfte des nächst benachbarten Siebstranges vereinigen (Fig. 161 A). 2. Die Siebstränge der Wurzel verlaufen geradlinig in den Stengel; aber die Gefäßteile (Fig. 161 B) spalten sich durch einen radialen Spalt in je zwei Hälften; diese Hälften drehen sich darauf je um 180° mit den Primanen als Drehpunkt, weichen, ähnlich wie bei den Siebsträngen unter 1, tangential auseinander und legen sich alsdann hinter die benachbarten Siebstränge, wo sie sich je mit der Hälfte des nächst benachbarten Gefäßstranges vereinigen. Eine Abart dieses verbreitetsten Typus kommt durch gleichzeitige Spaltung auch der Siebstränge (wie bei 1) zustande, so daß im Stengel doppelt so viele kollaterale Bündel wie Gefäßstränge (oder Siebstränge) in der Wurzel entstehen.