ZWEITER TEIL Spezielle Botanik. (continued 2)
Reading edition
2. Ordnung. Tilopteridaceae[341]. Nur wenige Vertreter, die sich in vegetativer Hinsicht an einfachere Phaeosporeen (Ectocarpus) anschließen, so die nordatlantische Tilopteris Mertensii. Die Oogonien erzeugen nur je eine große Eizelle, die Antheridien kleine zweizilige Spermien. In den ungeschlechtlichen Sporangien tritt keine Sonderung in einzelne Sporen ein, sondern ihr Inhalt wird zu einer einzigen großen, mit Membran versehenen Monospore mit meist 4 Kernen, während bei den Dictyotaceen sich an ihrer Stelle 4 freie Sporen bilden.
3. Ordnung. Dictyotaceae[342]. Hierher gehören nur wenige in vegetativer Hinsicht weiter als vorige Ordnung vorgeschrittene Gattungen, z. B. die mediterrane, fächerförmig gestaltete Padina Pavonia, die in europäischen Meeren verbreitete bandförmige, typisch gabelig verzweigte Dictyota dichotoma (Fig. 83). Die Sporen entstehen ähnlich wie bei den Rotalgen, meist zu vier als sog. Tetrasporen, seltener zu acht, und sind membranlos, unbeweglich, ohne Zilien, also als Aplanosporen zu bezeichnen (Fig. 358 1). Man kann die Tetrasporangien von den unilokulären der Phaeosporen ableiten. Oogonien und Antheridien stehen bei Dictyota je gruppenweise zusammen; sie bilden sog. Sori (Fig. 358 3, 2), die aus nebeneinander stehenden Rindenzellen nach Abgliederung je einer Stielzelle hervorgehen. An den Antheridiengruppen bleiben bei Dictyota die peripheren Zellen steril und bilden eine Art Hülle. Die Oogonien erzeugen nur je eine große einkernige, ausschlüpfende Eizelle, die vielzelligen Antheridien, die mit den plurilokulären Gametangien übereinstimmen, aus jeder Zelle je ein Spermium, das im Unterschied zu den übrigen Braunalgen nur eine einzige lange, seitlich inserierte Zilie besitzt. Die Zygoten keimen, ohne einen Ruhezustand zu erfahren.
Dictyota ist zweihäusig. Die haploiden männlichen und weiblichen Sexualpflanzen gehen hervor aus den ungeschlechtlich erzeugten Tetrasporen; aus den befruchteten Eizellen entstehen diploide Pflanzen, welche ungeschlechtliche Tetrasporen erzeugen. Die Reduktion der Chromosomenzahl von 32 auf 16 findet bei der Tetradenteilung in den Sporangien statt. So liegt hier ein regelmäßiger Generationswechsel vor; Gametophyt und Sporophyt zeigen aber im Bau ihres Thallus keinen morphologischen Unterschied.
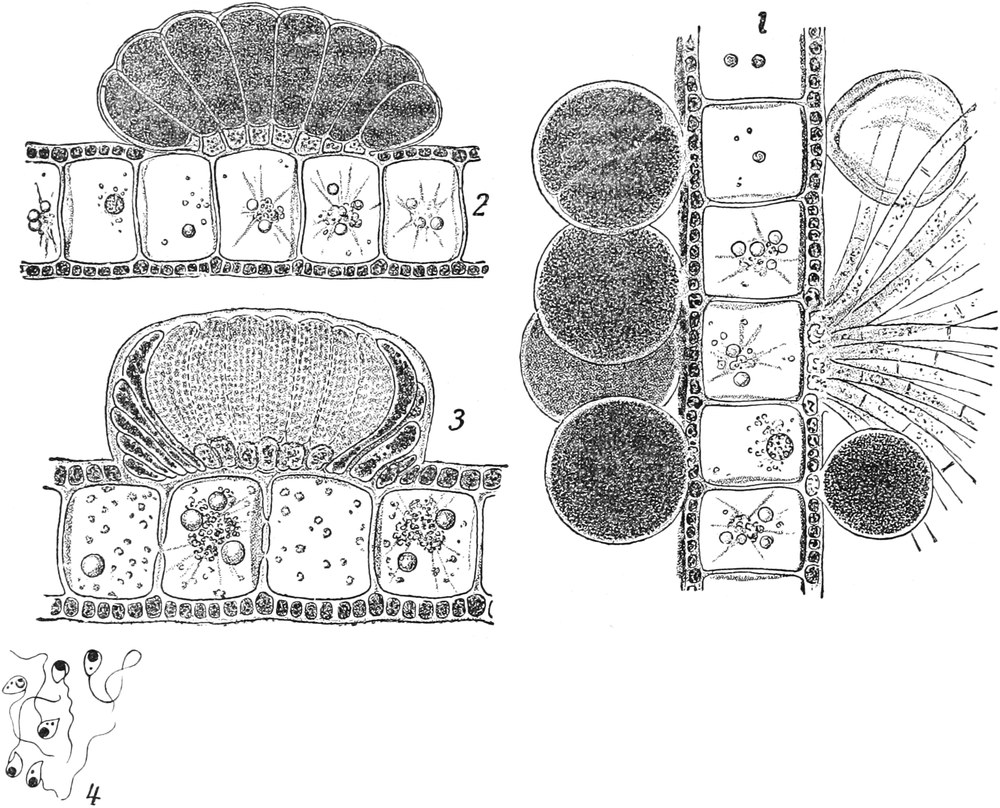
Fig. 358. Dictyota dichotoma. Thallusquerschnitte. 1 mit mehreren Tetrasporangien, davon eins entleert, 2 mit Oogoniumgruppe, 3 mit Antheridiengruppe, nach THURET, 4 Spermien, nach WILLIAMS. Aus OLTMANNS, Algen.
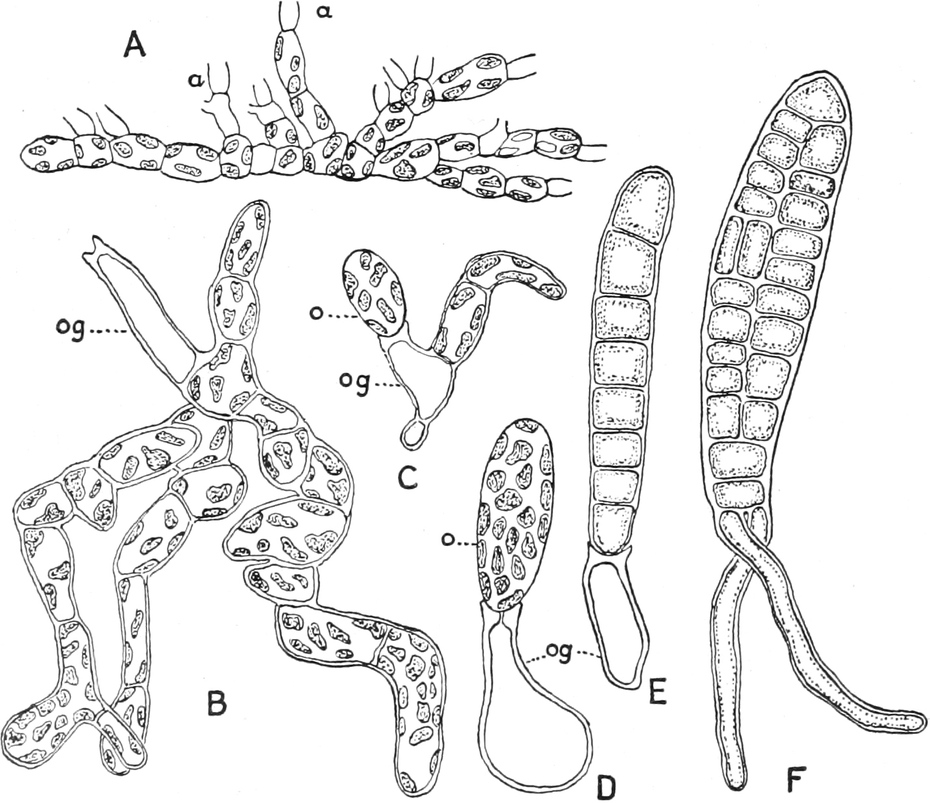
Fig. 359. Laminaria digitata. A Männlicher Gametophyt, a entleerte Spermatangien. B Größerer, C kleiner, D auf das Oogonium reduzierter weiblicher Gametophyt, og Oogonium, o Eizelle. E Junger Sporophyt, noch auf dem entleerten Oogonium sitzend. F Weiteres Stadium mit zwei Rhizoïden. A Vergr. 600, B 292, C 322, D 625, E 322, F 390. Nach H. KYLIN.
4. Ordnung. Laminariaceen[343]. Der erst in den letzten Jahren entdeckte regelmäßige Generationswechsel dieser stattlichsten aller Braunalgen entspricht dem der Farne insofern, als auch hier die Gametophyten, durchaus verschieden von den Sporophyten, nur winzige Zwergpflänzchen vorstellen. Der diploide Sporophyt erzeugt keulenförmige oder zylindrische Sporangien, die in ausgebreiteter oberflächlicher Schicht angeordnet sind. Jede Oberflächenzelle des Thallus setzt sich fort in eine mittlere keulenförmige sterile Zelle oder Paraphyse, neben denen die Sporangien als kürzere Zellen entspringen. In den Sporangien vollzieht sich die Reduktionsteilung. Aus den zweiziligen Schwärmsporen entwickeln sich winzige männliche und weibliche, haploide Geschlechtspflänzchen (Fig. 359), die aus Zellfäden sich aufbauen, die ersteren reicher verzweigt, die letzteren dagegen nur wenigzellig und im Extrem sogar nur aus einer schlauchförmigen Zelle gebildet. Die männlichen Gametophyten erzeugen die Antheridien an den Zweigspitzen neben- oder auch hintereinander als einzellige Gebilde, die nur je ein Spermium liefern; an den weiblichen kann jede Zelle zu einem eineiigen Oogonium werden. Die nackte Eizelle tritt durch ein Loch an der Spitze des Oogoniums hervor, bleibt aber vor der Mündung liegen und wächst dann nach der Befruchtung zum Keimling des Sporophyten (Fig. 359 E, F) heran. Oogonien und Antheridien sind den Gametangien der Phaeosporeen homolog.
Für Laminaria saccharina hat PASCHER an kultivierten jungen Keimpflänzchen des Sporophyten eine ausnahmsweise frühzeitig eintretende Sporangienbildung beobachtet. Es kann also auch der für gewöhnlich stattlich ausgebildete Sporophyt unter bestimmten äußeren Bedingungen auf einer einfacheren Entwicklungsstufe stehen bleiben. Wir gewinnen so einen Gesichtspunkt für die Erklärung des Zustandekommens des auffallenden Dimorphismus der Generationen.
5. Ordnung. Fucaceae[344]. Bei den Fucaceen fehlt die ungeschlechtliche Sporenbildung, dagegen ist sexuelle Fortpflanzung vorhanden und als Oogamie ausgeprägt. Bei Fucus sitzen die Oogonien und Antheridien in besonderen krugförmigen Vertiefungen, sog. Conceptacula, die zu vielen in die letzten angeschwollenen Auszweigungen des Thallus eingesenkt und für die ganze Familie sehr charakteristisch sind (vgl. Fucus serratus, Fig. 353). Bei F. platycarpus enthalten die Konzeptakeln (Fig. 360) sowohl Oogonien als Antheridien, bei F. vesiculosus dagegen herrscht Diözie. Der Innenwand der Conceptacula entspringen zahlreiche, unverzweigte, sterile Haare, sog. Saftfäden oder Paraphysen, die zum Teil als Büschel nach außen hervortreten, und zwischen ihnen die Oogonien und Antheridien. Die Antheridien sitzen als ovale Zellen dicht gedrängt an reich verzweigten, kurzen Fäden (Fig. 380 a, 361 1). Der Inhalt des Antheridiums teilt sich in 64 Spermien; er wird als Ganzes, von der dünnen inneren Wandschicht umgeben, entleert (Fig. 361 2) und entläßt dann die birnförmigen, hauptsächlich aus Kernsubstanz bestehenden, mit zwei verschieden langen seitlichen Zilien, einem orangegelben Chromatophor und einem roten Augenfleck versehenen Spermien. Die Oogonien (Fig. 360 o, 361 3) sind große rundliche, auf einzelligem Stiel sitzende, gelbbraune Gebilde, deren Zellhaut acht große, aus der Oogoniummutterzelle durch Teilung entstandene Eizellen umschließt. Der Oogoniuminhalt tritt, von einer dünnen Hülle umgeben, aus der aufplatzenden Oogoniumwand heraus; die Hülle verquillt am oberen Teil, stülpt sich teilweise zurück, und die nackten braunen Eier werden nun frei ins Wasser entleert (Fig. 361 4, 5). Dort haften die Spermien in großer Menge ihnen an, versetzen sie durch ihre Zilien in rotierende Bewegung, wobei die Befruchtung durch ein Spermium erfolgt (Fig. 361 6). Nach der Befruchtung umgibt sich das Ei mit Membran, setzt sich fest und wächst unter Teilung zu einer neuen Pflanze heran.
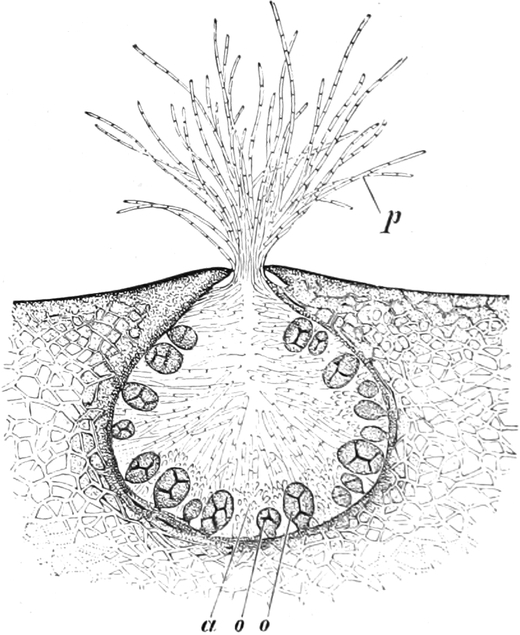
Fig. 360. Fucus platycarpus. Monözisches Conceptaculum mit Oogonien verschiedenen Alters o und Antheridienbüscheln a, Paraphysen p. Vergr. ca. 25. Nach THURET.
Bei anderen Fucaceen werden in dem Oogonium nur vier, zwei oder schließlich auch nur ein befruchtungsfähiges Ei erzeugt; immer aber teilt sich der eine Kern der Oogoniumanlage nach OLTMANNS in acht Kerne, wovon dann in diesen Fällen vier, zwei oder einer zu Eikernen ausgebildet werden, die übrigen als befruchtungsunfähige Eikerne zugrunde gehen.
Da die Fucaceen der ungeschlechtlichen Sporenbildung ermangeln, so fehlt ihnen der für Laminaria charakteristische Generationswechsel. Der aus der befruchteten Eizelle hervorgehende Fucus-Thallus, der durchaus dem Laminarien-Thallus gleichwertig ist, hat diploide Zellkerne, deren Reduktion erst in den Anlagen der Oogonien und Antheridien, und zwar in den ersten zwei Teilungsschritten erfolgt, so daß vier haploide Kerne erzielt werden, die im Oogonium dann noch eine, im Antheridium noch vier Teilungen bis zur Bildung der Sexualzellen erfahren. Bei Fucus ist also nur eine ganz kurze haploide Phase zu erkennen. Die Entwicklung und Beschaffenheit der Sexualorgane, namentlich der Oogonien, läßt die Deutung zu, daß sie morphologisch den Sporangien der Laminarien homolog sind, daß aber in ihnen an Stelle von Sporen Gameten differenziert werden. Die Fucaceen bezeichnen somit das Endglied in der Reduktion des Gametophyten, die bei den Laminarien noch nicht ganz so weit vorgeschritten erscheint.
Nutzpflanzen der Phaeophyceen sind: die früher offizinellen Laminaria digitata und L. Cloustoni (Pharm. germ.), deren Thallusstiele getrocknet als Quell-Stifte (stipites Laminariae) in der Chirurgie Verwendung fanden. — Verschiedene Laminariaceen und Fucaceen lieferten früher aus ihrer Asche (Varec, Kelp) Jod; auch wird Soda aus ihnen gewonnen. Viele Laminarien sind reich an Mannit (z. B. Lam. saccharina), dienen zur Gewinnung seiner und werden auch, besonders von Chinesen und Japanern, als Nahrung genossen.
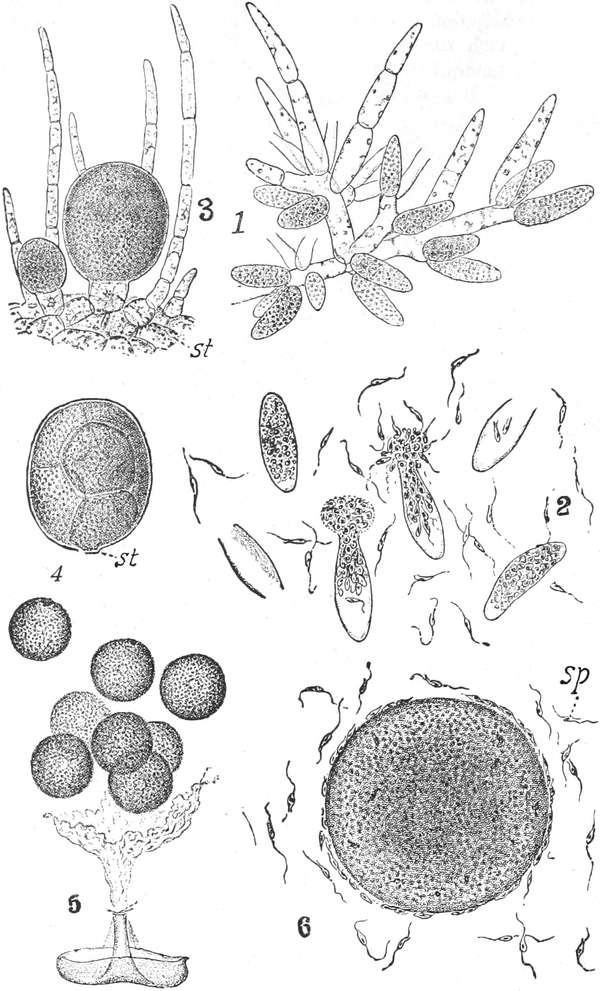
Fig. 361. Fucus. 1 Antheridiumstand. 2 Antheridien in Entleerung. 3 Oogonium in acht Eizellen geteilt. 4 Nach der Ablösung vom Stiel st. 5 Befreiung der Eier. 6 Ei von Spermien umschwärmt. Nach THURET, aus OLTMANNS, Algen, Hdw. d. Nat.
Die Characeen oder Charophyten bilden eine nach oben und unten hin isoliert stehende Gruppe von hochentwickelten grünen Thallophyten. Ihr Ursprung ist zwar bei den Chlorophyceen gesucht worden, jedoch gestatten sie infolge des eigenartigen Baues ihrer Sexualorgane keinen unmittelbaren Anschluß an oogame Grünalgen, verraten dagegen in einigen morphologischen Charakteren Analogien mit Braunalgen, von denen sie aber durch rein grüne Färbung der Chromatophoren abweichen. Man kann sie nicht etwa als Vorläufer der Moose ansehen, wenn auch ihre Karyokinese mit derjenigen der Archegoniaten weitgehende Übereinstimmung zeigt.
Die Characeen vegetieren in Form von oft über fußhohen Wiesen in Teichen und Bächen. Sie sind ausgezeichnet durch ihren regelmäßigen Aufbau; ihre Hauptachsen bestehen aus langen Internodien und kurzen Knoten, an denen aus wenigen Gliedern bestehende Seitenäste und Quirle entspringen (Fig. 362). Diese Seitenachsen sind entweder einfach oder tragen an ihren Knoten kurze Ausstrahlungen zweiter Ordnung. In der Achsel eines Seitenastes entspringt in jedem Quirl eine der Hauptachse ähnliche Seitenachse. So kommt ein armleuchterartiger Habitus zustande. Am Grunde sind die Achsen mittels farbloser, verzweigter, aus den Knoten entspringender fädiger Rhizoïdwurzeln im Substrat befestigt. Diese zeigen ebenfalls eine Gliederung in lange Fadenzellen und zwischen ihnen stehende kurze, hier einseitig gerichtete Knotenzellen, aus denen die Verzweigung erfolgt.
Haupt- und Seitenachsen wachsen an ihren Spitzen mittels Scheitelzellen, die durch Querwände Segmente abteilen; jedes Segment teilt sich nochmals durch eine Querwand, und nun entwickelt sich aus der unteren Zelle die langgestreckte, ungeteilt bleibende Internodienzelle; aus der oberen Zelle dagegen unter weiterer Teilung die Knotenscheibe, ferner die Seitenachsen und an dem unteren Teil der Hauptachsen auch die Rhizoïden. Während bei Nitella die Internodiumzellen nach außen hin frei bleiben, werden sie bei den meisten Arten von Chara mit einer Schicht längs verlaufender Zellreihen, die an den Knoten aus den Basilarzellen der Seitenachsen hervorwachsen, dicht umschlossen; diese morphologische Eigentümlichkeit wird in ähnlicher Art bei gewissen Braunalgen (z. B. Spermatochnus) angetroffen.
Die Zellen enthalten je einen normalen, auf karyokinetischem Wege entstandenen Zellkern. In den langen Internodialzellen aber teilt sich dieser amitotisch in zahlreiche Kerne, die in dem einen großen Saftraum umschließenden und lebhafte Strömung aufweisenden Plasmabelag verteilt liegen. Die grünen Chloroplasten sind rundlich und in großer Zahl vorhanden.
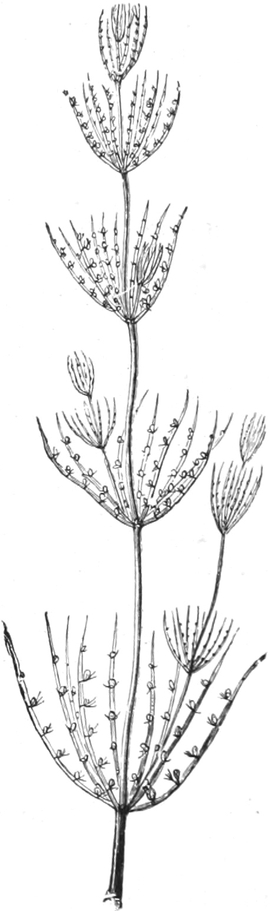
Fig. 362. Chara fragilis. Ende eines Hauptsprosses. Nat. Gr.
Ungeschlechtliche Fortpflanzung mittels Sporen fehlt vollständig; die sexuelle Fortpflanzung besteht in Eibefruchtung. Die weiblichen Organe, hier als Eiknospen bezeichnet, sind eiförmige, mit bloßem Auge sichtbare Gebilde und stehen ebenso wie die kugeligen, rotgefärbten männlichen Organe an den Knoten der Seitenachsen. Meist sind die Pflanzen monözisch, einige Arten auch diözisch. Die befruchtete Eizelle wird zu einer Oospore. Die Characeen zeigen also keinen Generationswechsel, sondern stets Aufeinanderfolge von Gametophyten.
Das männliche Organ (Fig. 363 A) geht aus einer sich zunächst in 8 Zellen teilenden Mutterzelle hervor. Jeder Oktant wird durch 2 tangentiale Wände in 3 Zellen zerlegt. So ergeben sich 8 äußere flache Wandzellen (Schilder), die durch einspringende Wände unvollständig gefächert werden: 8 mittlere Zellen (Griffzellen), die sich radial strecken, und 8 innere Zellen (primäre Köpfchenzellen), die rundliche Form annehmen. Infolge stärkeren Flächenwachstums der 8 Schilder entsteht im Innern des Organs ein Hohlraum, in den die Griffzellen mit ihren aufsitzenden Köpfchenzellen hineinragen. Letztere bilden 3–6 sekundäre Köpfchenzellen, und aus diesen sprossen nun in den Hohlraum hinein je 3–5 lange, aus scheibenförmigen Zellen bestehende, einfache, spermatogene Zellfäden, die aus jeder Zelle ein spiralig gewundenes, mit zwei Zilien versehenes Spermium (Fig. 363 C) entlassen. Morphologisch erinnern diese Zellfäden oder Antheridien an die plurilokulären Braunalgengametangien, die z. B. bei Stilophora ebenfalls aus einfachen Zellreihen bestehen und in Gruppen (Sori) beieinanderstehen. Das männliche Organ der Characeen, das als Ganzes zwar gewöhnlich Antheridium genannt wird, enthält also 8 Antheridiengruppen von endogener Entwicklung und sollte demnach als Antheridienstand bezeichnet werden.
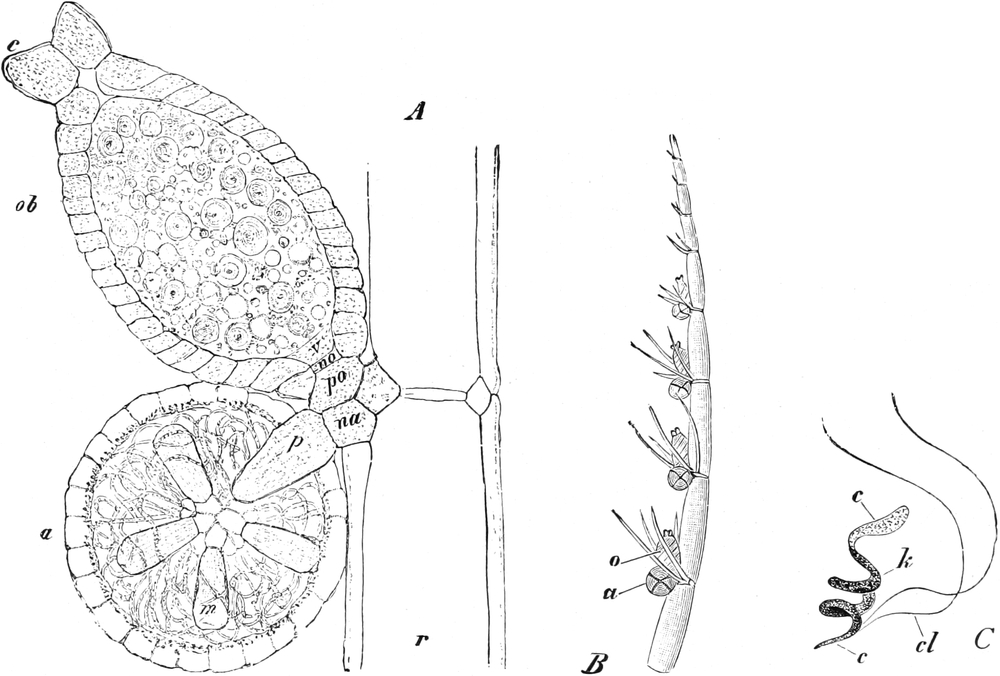
Fig. 363. Chara fragilis. A Medianer Längsschnitt durch eine Seitenachse r, a Antheridiumstand, und zwar na Basilarknotenzelle, p Stiel, m die Griffzellen, aus deren aufsitzenden Zellen die spermatogenen Zellfäden entspringen, ob Eiknospe, und zwar po Stielzelle, no die Knotenzelle, v die Wendungszelle, c das Krönchen. Vergr. 60. B Ganze Seitenachse. Vergr. 6. C Spermium, k Kern, cl Zilien, c Plasma. Vergr. 540. Nach STRASBURGER.
Die Eiknospe (Fig. 363 ob) besteht aus einem Oogonium, das nur eine einzige mit Öltropfen und Stärkekörnern dicht gefüllte Eizelle enthält, anfangs frei hervorragt und dann von 5 schraubig gewundenen Hüllschläuchen dicht umschlossen wird. Letztere endigen in den Krönchen c, zwischen dessen Spalten die Spermien eindringen. Am Grunde des Oogoniums finden sich bei Chara eine, bei Nitella drei kleine sog. Wendungszellen, die von der anfangs einzelligen Oogoniumanlage abgeteilt wurden. Diese Teilungen entsprechen den ersten Teilungen in den Mutterzellen des männlichen Organs. Die Eiknospe kann daher als ein auf ein einziges Oogonium reduzierter Oogoniumstand betrachtet werden.
Nach der Befruchtung umgibt sich die Eizelle mit einer dicken farblosen Haut, und auch die Innenwände der Hüllschläuche verdicken sich, werden braun und mit einer Schicht von amorphem kohlensaurem Kalk bedeckt, während die äußeren weichen Zellwände der Schläuche bald nach dem Abfallen der Frucht vergehen.
Bei der Keimung der Oospore teilt sich nach OEHLKERS und ERNST der Kern schrittweise in vier Kerne: die erste Teilung ist eine heterotypische. Dann wird die Membran an der Spitze durch die sich hier vorwölbende Zygotenzelle geöffnet. Drei Kerne verbleiben im Bauchteil der Zygote, wo sie degenerieren, der vierte, sich vergrößernde Kern aber wandert in die hervortretende Ausstülpung, die dann durch eine Querwand abgegrenzt wird. Aus dieser Zelle geht unter weiterer Teilung ein einfach gestalteter, fadenförmiger, mehrgliedriger Keimling hervor, an dessen erstem Knoten Rhizoïden entspringen, während am zweiten einige einfache Seitenachsen stehen, sowie eine oder mehrere Hauptachsen, aus deren weiterer Verzweigung die fertige Pflanze heranwächst. Das diploide Stadium beschränkt sich also bei den Characeen nur auf die Oosporen, während die Armleuchterpflanzen selbst haploid sind.
Bemerkenswertes Verhalten zeigt Chara crinita. Nach ERNST kommen von dieser diözischen Art die haploiden, 12 Chromosomen führenden männlichen und weiblichen Geschlechtspflanzen nur sehr zerstreut vor, weit verbreitet dagegen diploide 24 Chromosomen führende weibliche Pflanzen, die sich vermittelst diploider Eizellen parthenogenetisch vermehren und die aus der Kreuzung der Ch. crinita mit anderen Arten hervorgegangen sein sollen. Nach WINKLER aber könnte diese Diploidie durch Verdoppelung der Chromosomenzahl in der Scheitelzelle einer weiblichen haploiden Pflanze zustande gekommen sein oder eher dadurch, daß von den bei der Reduktionsteilung in der Zygote entstehenden 4 Kernen die beiden weiblich differenzierten wieder miteinander verschmelzen. Es liegt also hier somatische Parthenogenese und nicht, wie man früher annahm, generative vor[346].
Einige Characeen zeichnen sich durch die Bildung besonderer, mit Stärke dicht gefüllter Knöllchen in der unteren Partie der Achsen aus. Diese dienen als Überwinterungsorgane und gehen entweder aus Knoten mit verkürzten Astquirlen hervor (so bei Tolypellopsis stelligera, wo sie sternförmige Gestalt haben) oder entsprechen modifizierten Rhizoïden (z. B. bei Chara aspera, wo sie kugelige, weiße Gebilde vorstellen).
In fossilem Zustand sind Characeen (in Form von Zygoten) schon aus dem Jura sicher nachgewiesen. Vielleicht gehören auch gewisse devonische Fossilien hierher.
Die Rotalgen, Rhodophyceen oder Florideen, bilden eine scharf umgrenzte Gruppe höherer Algen, deren phylogenetischer Ursprung vielleicht bei höher stehenden Grünalgen zu suchen ist, die jedoch auch Beziehungen zu den Braunalgen zeigt. Sie sind wie die letzteren fast ausschließlich Meeresalgen und bewohnen vorzugsweise die tieferen Algenregionen an den Küsten. Nur wenige Gattungen (Batrachospermum z. B.) wachsen im Süßwasser, am Boden fließender Gewässer.
Der Thallus der Rotalgen weist große Mannigfaltigkeit auf. Die einfachsten Formen stellen verzweigte Zellfäden dar (z. B. Callithamnion). Bei anderen baut sich der verzweigte, zylindrische Thallus aus mehreren Zellen im Querschnitt auf. Zahlreiche Formen besitzen einen breiter oder schmäler bandförmigen und oft reich fiederig oder gabelig verzweigten Thallus (z. B. Chondrus crispus Fig. 364, Gigartina mamillosa Fig. 365). Sodann gibt es Arten, die in Form von Zellflächen der Unterlage aufliegen. Alle Florideen sitzen an der Basis mittels Haftfäden oder Haftscheiben fest. Eine der reicher gegliederten Formen ist z. B. die Delesseria sanguinea (Hydrolapathum Fig. 88) des Atlantischen Ozeans. Der blattartige, einer Basalscheibe entspringende Thallus ist hier mit Mittel- und Seitenrippen versehen. Im Herbst gehen die Spreiten zugrunde; die Hauptrippen aber bleiben als Achsen stehen, um im nächsten Frühjahr neue Thallusblätter zu treiben. Die Familie der Corallinaceen, deren Gattungen teils einen zierlich verzweigten, teils einen krustenförmigen Thallus aufweisen, zeichnet sich dadurch aus, daß in und um die Membranen kohlensaurer Kalk massenhaft abgelagert wird, so daß diese Algen etwa den Eindruck von Korallen machen. Die Kalkflorideen vegetieren hauptsächlich an Küsten mit starker Brandung, besonders in den Tropen.
Die Rotalgen sind meist rot oder violett, auch purpurschwarz oder braunrot gefärbt. Ihre scheibenförmigen, ovalen oder gelappten Chromatophoren treten in größerer Zahl und dichter Lagerung in den Zellen auf und enthalten außer Chlorophyll einen roten Farbstoff, das Phykoërythrin, bei gewissen Arten außerdem auch blaues Phykozyan; sie gehen aus farblosen spindelförmigen Leukoplasten der Scheitelzellen und Keimzellen hervor. Als Assimilationsprodukt wird aus Glykose nicht echte Stärke erzeugt, sondern ein anderes Kohlehydrat, die Florideenstärke, in Form von rundlichen, oft geschichteten, mit Jod sich rötlich färbenden Körnchen. Auch Öltröpfchen kommen vor. Die Zellen sind einkernig oder auch mehrkernig.
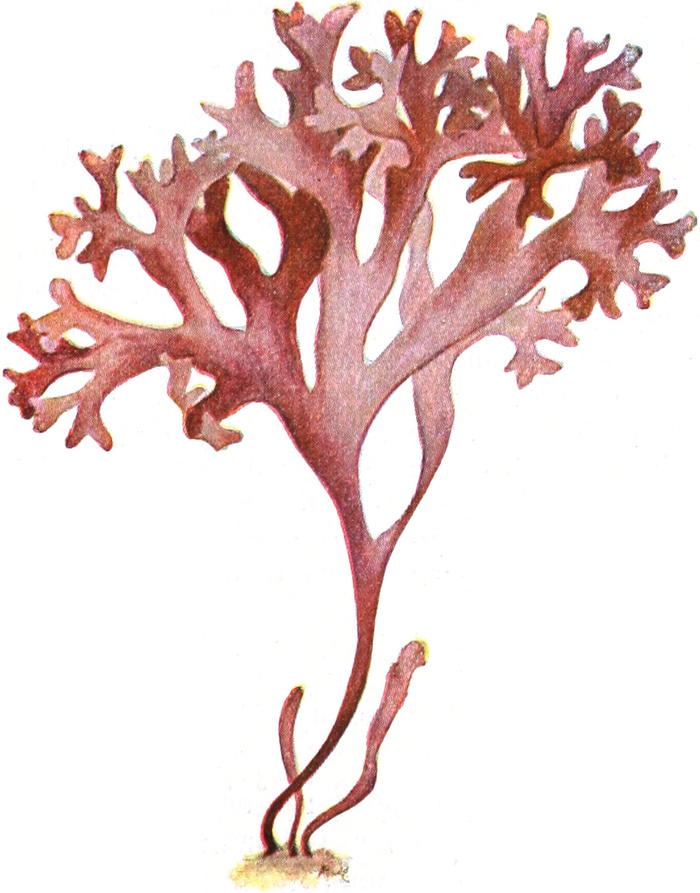
Fig. 364. Chondrus crispus. Nach einem Exemplar von Helgoland. 1⁄2 nat. Gr. Offizinell.
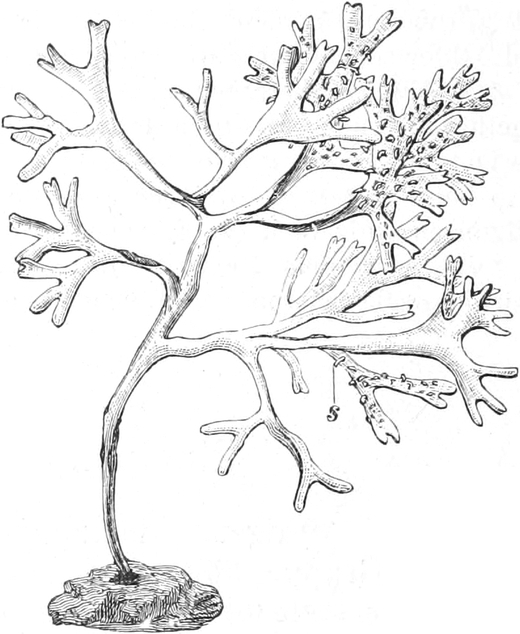
Fig. 365. Gigartina mamillosa. s Warzenförmige Fruchtkörper. 3⁄4 nat. Gr. Offizinell.
Die Fortpflanzung geschieht bei den Florideen einerseits ungeschlechtlich mittels Sporen, andererseits geschlechtlich mittels Befruchtung weiblicher Organe durch männliche Zellen.
Die ungeschlechtlichen Sporen werden auf zweierlei Weise gebildet. Im ersten Falle sind es nackte, runde, unbewegliche, einkernige Zellen ohne Zilien, die zu vier durch Teilung in einem Sporangium entstehen. Die Sporangien sitzen als rundliche Körper an den Thallusfäden oder sind dem Thallus eingesenkt; sie entlassen die vier Sporen aus einem Querriß ihrer Wandung. Infolge ihrer Entstehung zu vieren nennt man die Florideensporen Tetrasporen (Fig. 366). Sie vertreten die Rolle der Schwärmsporen der übrigen Algen und finden sich in ähnlicher Weise nur bei den Dictyotaceen unter den Braunalgen wieder. Die Tetrasporangien führen in der Regel anfangs einen Kern, der sich dann in die vier Sporenkerne teilt. In einigen Fällen (Martensia, Nitophyllum) aber sind sie zwar anfangs vielkernig, dann aber degenerieren alle Kerne bis auf einen, der die vier Sporenkerne liefert. Den Tetrasporangien gleichwertig sind die in der Gruppe der Nemalionaceen auftretenden, nur je eine Spore entlassenden Monosporangien, sowie auch die zahlreiche Sporen erzeugenden Polysporangien der Ceramiaceen.
Die zweite Form ungeschlechtlicher Sporen der Rotalgen sind die Karposporen (vgl. S. 374), die in Einzahl aus endständigen Karposporangien als kugelige, anfangs nackte, zilienlose Protoplasten entleert werden, also äußerlich sich den Monosporen nähern.
Die Ausbildung der Sexualorgane, besonders der weiblichen, ist sehr eigenartig und von dem Verhalten der übrigen Algen sehr abweichend. Sie sei an dem Beispiel von Batrachospermum moniliforme, einer einheimischen Süßwasserfloridee, erläutert. Diese Alge besitzt einen in Gallerte gehüllten, bräunlichen, aus wirtelig verzweigten Fäden bestehenden Thallus, der im Herbst fruktifiziert. Die Sexualorgane sitzen in den Zweigquirlen an kurzen, dicht zusammengedrängten Seitenästchen.
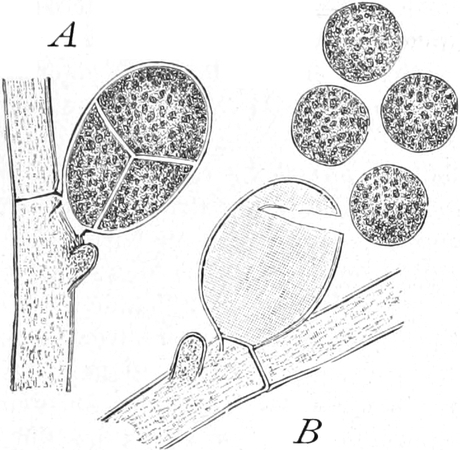
Fig. 366. Callithamnion corymbosum. Tetrasporenbildung. A Geschlossenes, B entleertes Sporangium mit den vier ausgetretenen Tetrasporen. Nach THURET.
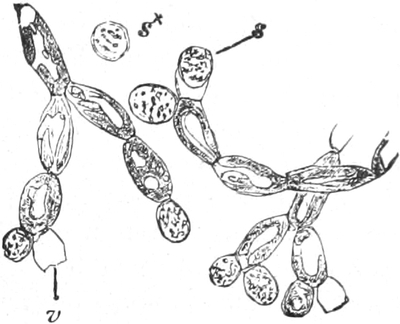
Fig. 367. Batrachospermum moniliforme. Wirtelzweige mit Antheridien. Bei s* ein Spermatium, bei s ein solches im Augenblick der Entleerung, bei v ein leeres Antheridium. Vergr. 540. Nach STRASBURGER.
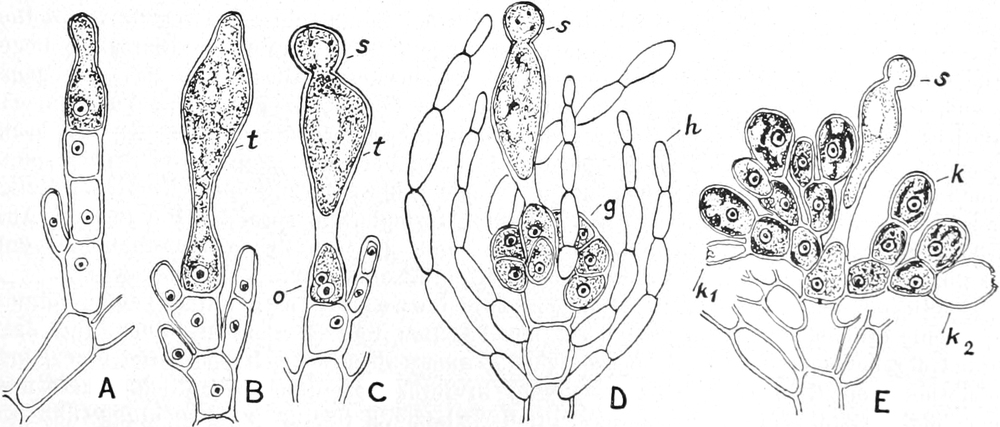
Fig. 368. Batrachospermum moniliforme. A Anlage eines Karpogons am Ende eines Zweiges. B Reifes Karpogon, t Trichogyn. C Nach Befruchtung durch ein Spermatium s, Eizelle o mit den beiden kopulierenden Sexualkernen. D Gonimoblasten g und Hüllfäden h. E Teil eines reifen Gonimoblasten mit den Karposporen k, k1 und k2 entleert. A–D Vergr. 960, E Vergr. 720. Nach H. KYLIN.
Die Antheridien, auch Spermatangien genannt (Fig. 367), sprossen meist in Zweizahl aus den Endzellen der Wirtelzweige hervor. Jedes Antheridium besteht aus nur einer Zelle, deren gesamtes Plasma in die Bildung eines einzigen Spermatiums aufgeht. Die Spermatien werden aus der zurückbleibenden Zellhaut entleert, sind rundlich, farblos, anfangs einkernig, nur bei Batrachospermum und Nemalion später zweikernig. Sie sind nackte Zellen, können sich nicht selbständig bewegen wie die mit Zilien versehenen Spermien der übrigen Algen und verdanken diesem Unterschied ihre besondere Bezeichnung. Die weiblichen Organe, hier Karpogonien genannt, sitzen ebenfalls an Zweigenden, zwischen den Antheridien tragenden Ästen. Das Karpogon (Fig. 368) besteht aus einer langen, im unteren Teil flaschenförmig angeschwollenen, im oberen Teil keulenförmig gestalteten Zelle. Der Basalteil enthält Eikern und Chromatophoren, der obere wird als Trichogyn bezeichnet und fungiert als Empfängnisorgan für die Spermatien, die zu einem oder mehreren an seiner Spitze festhaften, sich mit einer Membran umgeben und dann ihren Inhalt durch eine entstehende Öffnung in das Karpogon unter Zurücklassung ihrer Membran entlassen. In der Regel enthält das junge Karpogon der Florideen zwei Zellkerne, von denen der in dem Trichogyn vorhandene später degeneriert. Bei Batrachospermum aber ist nur ein Kern im Bauchteil sicher nachgewiesen, und bei Nemalion soll die Bildung des Trichogynkernes nach CLELAND meist unterbleiben. Trotz ihres auffallend verschiedenen Baues sind beide Sexualorgane der Rotalgen als homolog zu erachten[348].
Nachdem Spermakern und Eikern miteinander verschmolzen sind, grenzt sich die Eizelle vom Trichogyn durch eine Querwand ab, wird aber nicht zu einer Oospore, sondern aus den Seitenflächen des Bauchteils des Karpogons wachsen vielmehr sich weiter verzweigende Zellen oder Zellfäden hervor, die sporogenen Fäden oder Gonimoblasten. Zugleich sprossen aus den Tragzellen des befruchteten Karpogons Hüllzweige, die sich um diese Gonimoblasten lagern und mit ihnen eine sog. Hüllfrucht, Zystokarp, bilden. Die sporogenen Fäden erzeugen in ihren anschwellenden Endzellen die kugelrunden, einen Kern und ein Chromatophor führenden Sporen, die man hier als Karposporen bezeichnet. Sie werden aus den zurückbleibenden Hüllen der Endzellen entleert. Aus den Karposporen entwickelt sich bei Batrachospermum zunächst ein aus Zellfäden bestehender Vorkeim, der aus seinen Endzellen ungeschlechtliche, einzellige, nackte, erst nach ihrer Festsetzung sich mit Membran umgebende Sporen (Monosporen) erzeugt. Diese dienen der Vermehrung des Vorkeims. Schließlich wachsen einzelne Zweige des Vorkeims zu den geschlechtlich differenzierten Thallusfäden heran. Die Sporenbildung am Vorkeim entspricht der Tetrasporenbildung der übrigen Florideen.
Die Bildung der Antheridien[349] sowohl, wie auch der oft sehr verwickelt gebauten Zystokarpien folgt bei den Florideen verschiedenen Typen. Überall aber lassen sich die Karposporen nach OLTMANNS in ihrer Entstehung als Abkömmlinge der befruchteten Eizelle nachweisen.
Als Beispiel für reichere Ausbildung der karposporenbildenden Generation sei die an den wärmeren europäischen Küsten verbreitete Dudresnaya coccinea, mit büschelig reich verzweigtem Thallus, gewählt (Fig. 369). Die Karpogonäste bestehen aus etwa sieben Zellen; die endständige Karpogonzelle trägt ein sehr langes Trichogyn. Nach der Befruchtung treibt die Karpogonzelle einen Zellfaden nach unten, der sich weiterhin verlängert und verzweigt und schrittweise mit bestimmten, dichten Inhalt führenden vegetativen Zellen, den Auxiliarzellen, durch Fusion in Verbindung tritt. Die ersten Auxiliarzellen liegen in dem Karpogonast, die folgenden in anderen Seitenästen. Alle Kerne des sporogenen Fadens sind durch Teilung des befruchteten Eikerns hervorgegangen. Die Fusionen mit Auxiliarzellen führen nicht zu Kernverschmelzungen, sondern dienen nur der Ernährung der sporogenen Fäden. Aus der Karpogonzelle kann noch ein zweiter und dritter sporogener Faden in gleicher Weise entspringen. Aus den blasenförmig angeschwollenen Zellen der sporogenen Fäden, die mit den Auxiliarzellen fusionierten, sprossen nun je zwei Ausstülpungen hervor, welche sich weiter teilen und zu rundlichen Sporenhaufen entwickeln, aus denen die Karposporen schließlich entlassen werden.
Wir können somit bei allen Rotalgen zwei Generationen unterscheiden, einmal die geschlechtliche, den Gametophyt, der Eizellen und Spermatien bildet, und dann die aus der befruchteten Eizelle hervorgehende ungeschlechtliche, Karposporen erzeugende Generation, den Sporophyt. Beide sind in ihrer Gestaltung wesentlich voneinander verschieden, erstere eine selbständige Pflanze, letztere in ihrer Entwicklung und Ernährung von dieser abhängig, und vielleicht als eine eingeschobene, aus der Zygote neu hervorgegangene Bildung aufzufassen.
Die in Tetrasporangien oder in ihnen gleichwertigen Monosporangien oder Polysporangien erzeugten Sporen stellen eine zweite Form ungeschlechtlicher Sporen vor, durch die eine Vermehrung der Geschlechtspflanzen bewirkt wird. Sie können in einzelnen Fällen (Nemalion) übrigens ganz fehlen.
Bei gewissen Gattungen treten diese Sporangien ausschließlich auf den Geschlechtspflanzen selbst auf; bei der Mehrzahl der Gattungen aber gehen aus den Karposporen zunächst Pflanzen hervor, die nur Tetrasporen erzeugen, und aus den Tetrasporen erst die meist diözischen Geschlechtspflanzen, so daß dann die Entwicklung in drei Generationen, Gametophyt, Karposporophyt und Tetrasporophyt, verläuft. Von der geschlechtlichen Hauptgeneration hat sich hier also eine rein ungeschlechtliche, ihr im übrigen morphologisch gleiche und ihr vorangehende Generation abgespalten. Bei manchen Rotalgen mit solchem Entwicklungsgang tritt noch eine weitere Komplikation hinzu, indem an dem Gametophyten auch noch Tetrasporen oder diesen gleichwertige Monosporen erzeugt werden, aus denen dann wiederum Gametophyten hervorgehen.
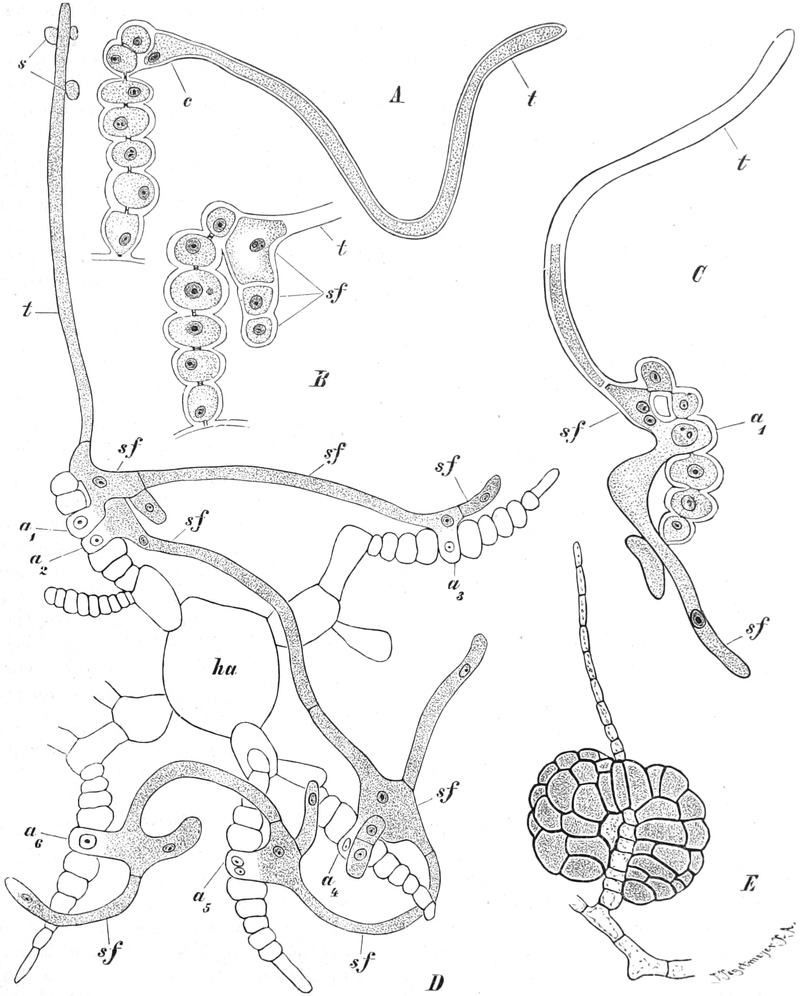
Fig. 369. Dudresnaya coccinea. A Karpogon-Ast, Karpogon c mit Trichogyn t. B Nach der Befruchtung, Karpogon zum sporogenen Faden sf ausgewachsen. C Verbindung dieses Fadens mit der ersten Auxiliarzelle a1. D Die Verzweigung des sporogenen Fadens und Verbindung mit sechs Auxiliarzellen a1–a6. Die Zellen a3–a6 sind Ästen eingefügt, die von der Achse ha entspringen. Schema. E Reifer Karposporenknäuel aus einem Ast hervorgegangen. Vergr. A–C ca. 500, D 250, E 300. A–D nach OLTMANNS, E nach BORNET.
Das Verhalten der Zellkerne und ihre Reduktionsteilung ist erst für eine kleine Zahl von Arten untersucht worden, wobei sich prinzipiell bemerkenswerte Verschiedenheiten in der Verteilung der haploiden und diploiden Phasen auf die Generationen herausgestellt haben[350].
Bei Scinaia tritt nach SVEDELIUS die Reduktion der Chromosomenzahl bei der ersten Teilung des befruchteten Eikernes auf, so daß nur dieser diploid ist, der Karposporophyt, die Karposporen und die aus letzteren hervorgehenden Gametophyten aber haploid werden. Der Gametophyt vermehrt sich hier außerdem noch ungeschlechtlich durch haploide Monosporen an Stelle der fehlenden Tetrasporen. Ebenso verhält sich nach KYLIN Batrachospermum, ferner Nemalion, bei welchem aber weder Monosporen noch Tetrasporen am Gametophyten vorkommen.
Es steht zu erwarten, daß bei allen Rotalgen mit einfachem Generationswechsel die Reduktionsteilung nach dem Scinaia-Typus verläuft, der als der primitive angesehen werden darf.
Bei denjenigen Rotalgen, die ihre Entwicklung in drei Generationen zurücklegen, ist dagegen die Reduktionsteilung in das Tetrasporangium verlegt, so daß die aus den Tetrasporen hervorgehenden Gametophyten haploid sind, während die Karposporophyten, die Karposporen und die aus letzteren hervorgehenden Tetrasporophyten hier die diploide Phase darstellen. So verhalten sich Polysiphonia, Griffithia, Delesseria, Nitophyllum, Rhodomela. Tritt nun in solchen Fällen an dem haploiden Gametophyten außerdem noch eine ungeschlechtliche Sporenbildung auf, so muß diese naturgemäß ohne Reduktionsteilung erfolgen. So verhält sich nach SVEDELIUS der Gametophyt von Nitophyllum punctatum, der außer Sexualorganen auch noch Monosporangien bildet, durch deren Sporen er eine weitere Vermehrung erfährt. Diese Monosporangien entsprechen den an den Tetrasporophyten auftretenden Tetrasporangien, sind anfangs vielkernig, erzeugen aber unter Degeneration aller Kerne bis auf einen und unter Wegfall einer Reduktionsteilung nur je eine haploide Monospore.
Besonderes Interesse verdient eine kleine Nordseefloridee Harveyella mirabilis[351], welche auf einer anderen Rotalge, der Rhodomela subfusca, parasitisch in Form von kleinen weißlichen Polstern auftritt. Chromatophoren sind in ihren Zellen nicht mehr nachweisbar, so daß diese Floridee sich wie ein Pilz ernährt. Ebenso verhalten sich noch einige andere Arten.
Offizinell sind Gigartina mamillosa (Fig. 365) mit zäpfchenförmigen, 2–5 mm langen, dem Thallus aufsitzenden Zystokarpien und Chondrus crispus (Fig. 364) mit ovalen, der Thallusfläche eingesenkten, etwa 2 mm langen Zystokarpien und mit Tetrasporangienlagern an den Thallus-Endsegmenten. Beide leben an den Nordseeküsten als purpurrote Algen; getrocknet sind sie von hellgelblicher Farbe und liefern, besonders Chondrus, das offizinelle Carrageen oder irländische Moos (Pharm. germ., austr., helv.), das zur Gallertbereitung verwendet wird. — Verschiedene Florideen liefern das ebenfalls zur Gallertbereitung benutzte Agar-Agar; so Gelidium corneum und cartilagineum das Agar von Japan; Sphaerococcus (Gracilaria) lichenoides das Agar von Ceylon (auch Fucus amylaceus genannt); Eucheuma spinosum das Agar von Java und Makassar.
Im Bau des Thallus und auch der Sexualorgane zeigen die meisten Algenpilze nähere Beziehungen zu den Schlauchalgen oder Siphoneen, unter denen vielleicht ihr phylogenetischer Ursprung zu suchen ist; indessen deuten gewisse Formen auch auf andere niedere grüne Algen hin, so z. B. die Basidiobolaceen auf Conjugaten und die Chytridiaceen als einfache Algenpilze auf Protococcales und Flagellaten. Wenn zurzeit die Phykomyceten noch als geschlossene Klasse aufgeführt werden, so geschieht dies mit dem Vorbehalt ihrer späteren Auflösung in mehrere an die entsprechenden Algenklassen anzugliedernde Reihen.
Im einfachsten Falle, bei Chytridiaceen, besteht der Thallus aus einer einfachen Zelle, die in den ersten Stadien sogar einen membranlosen Protoplasten vorstellt. Bei den höher stehenden Formen weist der schlauch- oder fadenförmige, meist reich verzweigte Thallus, wie bei Vaucheria, bis zur Bildung der Fortpflanzungsorgane keine Querwände auf und umschließt ein einheitliches Plasma, in welchem zahlreiche sehr kleine Zellkerne, aber keine Chromatophoren enthalten sind. Die Pilzfäden bezeichnet man als Hyphen,
den ganzen Thallus als Myzelium. Meist sind die Hyphen ungegliedert, nur in wenigen Fällen tritt eine Gliederung der Hyphen durch Querwände ein. Die Algenpilze leben teils saprophytisch im Wasser auf faulenden Pflanzen oder Tieren oder an der Luft auf verwesenden organischen Substanzen, teils parasitisch in den Geweben von höheren Pflanzen oder auch von Insekten.
Die ungeschlechtliche Vermehrung geschieht durch Sporen, die meist in Sporangien erzeugt werden. Das gesamte Protoplasma der Sporangien zerklüftet sich in zahlreiche Sporenzellen, die bei den wasserbewohnenden Gattungen als zilientragende Schwärmsporen entlassen werden (Fig. 372), bei den terrestrischen dagegen vor der Entleerung bereits mit Membran umkleidet und so der Verbreitung in der Luft angepaßt sind (Fig. 378). Bei gewissen Gattungen werden neben den Sporangien oder auch ausschließlich Konidien gebildet durch Hervorsprossung und Abschnürung von Sporenzellen aus Hyphen, die dann meist als Konidienträger sich vom Substrat erheben. Die Verbreitung der Konidien findet ebenfalls in der Luft statt.
Die Sexualorgane bieten viel Eigenartiges. Nach ihrer Beschaffenheit unterscheiden wir bei den höher stehenden Phykomyceten die beiden Gruppen der Oomyceten und Zygomyceten. Bei den Oomyceten, die den Siphonales noch am nächsten stehen, differenzieren sich Oogonien und Antheridien, und letztere entleeren durch schlauchartige Ausstülpungen ihren Inhalt in erstere, die dann nach der Befruchtung Oosporen liefern. Nur bei Monoblepharis werden noch freie Spermien gebildet. Bei den Zygomyceten sind die beiden Sexualorgane von gleicher Beschaffenheit und liefern eine Zygospore. Sie sind aber meist vielkernig und entsprechen dann morphologisch je einem ganzen Gametangium der isogamen Grünalgen. Bei den einfacheren Phykomyceten, den Archimyceten, sind nur in wenigen Fällen Sexualorgane, Antheridien und Oogonien oder auch einander gleiche Gameten beobachtet worden.
Vielkernige Gametangien, Oogonien und Antheridien, die ihre Gameten nicht trennen und einzeln ausschlüpfen lassen, sondern direkt miteinander kopulieren, werden insgemein als Cönogameten bezeichnet.
1. Ordnung. Archimycetes[355].
Die hierher gehörigen Chytridiaceen sind mikroskopisch kleine, in Algen, Wasserpilzen, Wassertieren oder in den Zellen von Landpflanzen schmarotzende Pilze, deren Thallus nur bei einigen höher stehenden Gattungen die Form eines kleinen verzweigten Myzeliums aufweist, bei den meisten Vertretern aber eine einfache, in der Wirtszelle lebende Zelle vorstellt. Die ungeschlechtliche Vermehrung erfolgt durch ein- oder zweizilige Schwärmsporen, die sich auf der Nährpflanze festsetzen und ihren Protoplasten in die Wirtszelle eintreten lassen. Der Protoplast wächst heran, bleibt anfangs membranlos, umgibt sich dann mit Membran und wird zu einem vielkernigen Sporangium, das zahlreiche einkernige Schwärmsporen, meist aus einem halsförmigen Fortsatz, nach außen entläßt. Auch werden dickwandige Dauersporangien gebildet, die erst nach längerer Ruhe Schwärmsporen erzeugen. So verhält sich u. a. Olpidium Brassicae (Fig. 370), das in der Stengelbasis junger Kohlpflanzen schmarotzt und sie zum Absterben bringt.
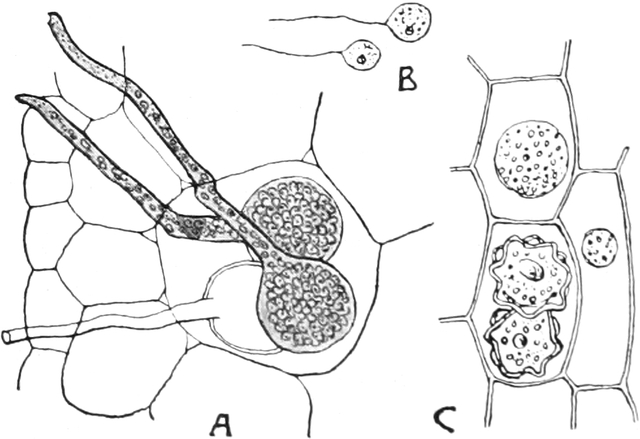
Fig. 370. Olpidium Brassicae. A Drei Zoosporangien, eines entleert. Vergr. 160. B Zoosporen. Vergr. 520. C Dauersporangien. Vergr. 520. Nach WORONIN.
Geschlechtliche Fortpflanzung, der Bildung der Dauersporangien vorausgehend, ist nur bei wenigen Vertretern sicher nachgewiesen. Bei dem auf Vicia unijuga schmarotzenden Olpidium Viciae sind die eingeißeligen Schwärmsporen teils asexuell, und aus ihnen gehen nach ihrem Eindringen in eine Wirtszelle nach wenigen Tagen wieder Zoosporangien hervor, teils aber kopulieren sie als Planogameten paarweise miteinander zu einer dann mit zwei Geißeln versehenen nackten Zygote, die sich auf der Nährpflanze festsetzt, mit Membran umgibt und ihren Protoplasten in eine Epidermiszelle entleert. Hier entwickelt sich die Zygote zu einem Dauersporangium, in welchem erst die beiden Gametenkerne kopulieren und dessen Inhalt zahlreiche Zoosporen liefert.
Ähnlicher Entwicklungsgang ist von CURTIS auch für Synchytrium (Chrysophlyctis) endobioticum nachgewiesen. Dieser sehr schädliche Pilz, der als Erreger des Kartoffelkrebses warzenförmige, später zerfallende und verfaulende Wucherungen an Knollen und Sprossen seiner Nährpflanze hervorruft, breitet sich in neuerer Zeit in Europa aus. Seine mehrere Jahre lebensfähig bleibenden derbwandigen Dauersporangien entlassen im Frühjahr einzilige Zoosporen, die in junge Knollenzellen eindringen und hier zu größeren, mit orangegelber äußerer und hyaliner innerer Membran versehenen Zellen (Prosorus) heranwachsen. Ihr Protoplast tritt dann in das Plasma der Wirtszelle aus, zehrt es auf und teilt sich in eine Gruppe (Sorus) von rundlichen, dünnwandigen Einzelsporangien, die je 200–300 einzilige kleine Schwärmsporen bilden und nach Verquellung des umliegenden Knollengewebes nach außen entlassen. Diese Zoosporen entwickeln sich in gleicher Weise wieder zu neuen Sori. Außer dieser ungeschlechtlichen Vermehrung kommt aber auch geschlechtliche vor. Die den Zoosporen gleichgestalteten Gameten kopulieren paarweise zu Zygoten, die als nackte Zellen wieder in die Kartoffeln eindringen und in ihren Wirtszellen zu Dauersporangien heranwachsen. Ob Sporangien oder Gametangien in den Sori gebildet werden, scheint von äußeren Lebensbedingungen abzuhängen.
Bei der auf Saprolegniafäden schmarotzenden Olpidiopsis vollzieht sich die Kopulation in anderer, mehr an das Verhalten der höheren Phykomyceten erinnernder Weise. Größere weibliche und kleinere männliche Protoplasten, beide anfangs noch membranlos, liegen in den Nährzellen nebeneinander, wachsen heran, werden vielkernig, umgeben sich mit Zellulosewänden, und nun tritt der Inhalt des männlichen in den weiblichen über, der zu einer dickwandigen Oospore wird; die Kerne scheinen paarweise zu verschmelzen. Das Schicksal der Oospore ist unbekannt. Außerdem vermehrt sich Olpidiopsis durch zweigeißelige, in Sporangien gebildete Zoosporen.
2. Ordnung. Oomycetes.
1. Nur bei der kleinen primitiven Familie der Monoblepharidaceen[356] entlassen die Antheridien freie Spermien, während bei den übrigen Oomyceten der vielkernige Antheridiuminhalt sich nicht mehr in freie Spermien sondert.
Die Monoblepharis-Arten finden sich an Pflanzenresten im Wasser, vermehren sich ungeschlechtlich durch einzilige Schwärmsporen, die in größerer Zahl in Sporangien erzeugt werden. Die meist terminal stehenden Oogonien enthalten nur eine Eizelle (Fig. 371); die den Sporangien ähnlichen Antheridien entlassen eine Anzahl von einziligen Spermien. Diese gelangen zu den Oogonien, deren Wandung sie an der Spitze auflösen, und dringen so zur Eizelle vor, die dann nach der Befruchtung zu einer stachelig behäuteten Oospore wird.
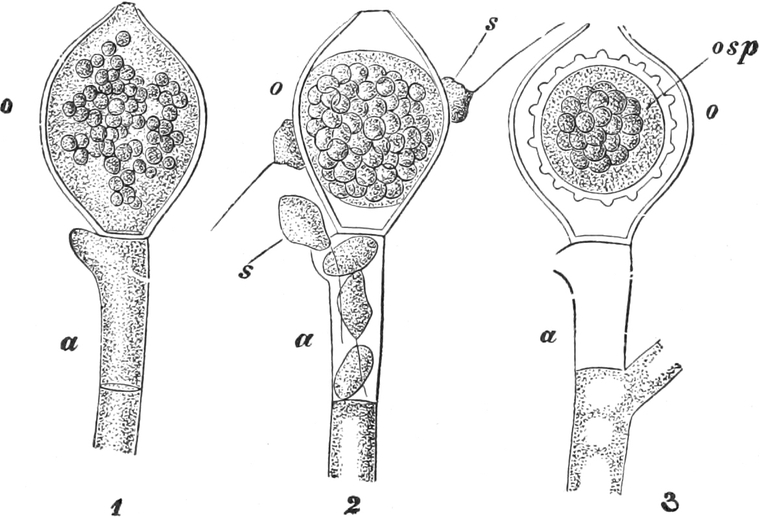
Fig. 371. Monoblepharis sphaerica. Ende eines Fadens mit einem Oogonium o und dem darunter liegenden Antheridium a, in 1 vor der Bildung der Eizelle und der Spermien, in 2 die letzteren s austretend und an dem Oogonium hinaufkriechend, in 3 reife Oospore osp, das Antheridium entleert. Vergr. 800. Nach CORNU. Aus V. TAVEL, Pilze.
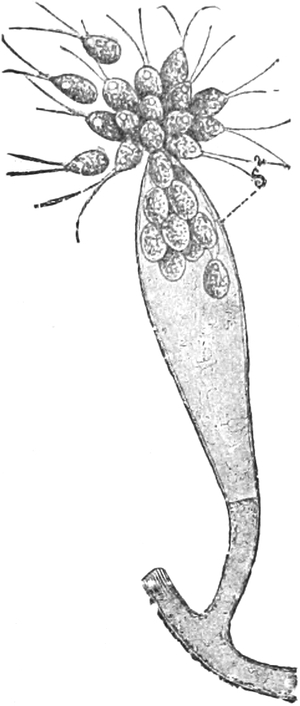
Fig. 372. Saprolegnia mixta. Sporangium die zweiziligen Zoosporen s2 entlassend. Nach G. KLEBS.
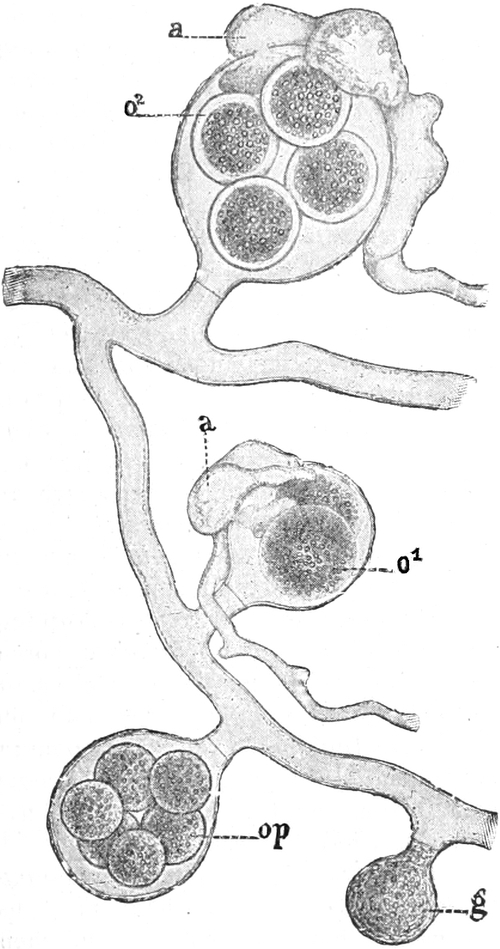
Fig. 373. Saprolegnia mixta. Faden mit Geschlechtsorganen. a Antheridium, das einen Befruchtungsschlauch in das Oogonium hineingetrieben hat, o1 Eizelle, o2 Oospore mit Membran umgeben, op parthenogenetische Oosporen, g junges Oogonium. Nach G. KLEBS.
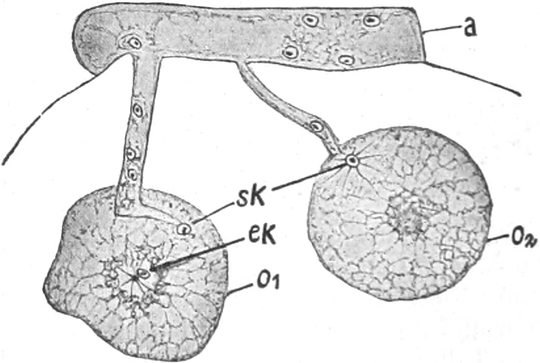
Fig. 374. Achlya polyandra. Befruchtung zweier Eizellen o eines Oogoniums durch zwei Schläuche des Antheridiums a. ek Eikern, in o2 der Eikern nicht im Schnitt getroffen, sk Spermakerne. Nach TROW.
2. An die erste Familie schließen sich die Saprolegniaceen[357] an, die mit ihren Myzelien ebenfalls im Wasser meist saprophytisch an der Oberfläche faulender Pflanzen, Insekten und sogar auf lebenden Fischen vegetieren. Sie vermehren sich ungeschlechtlich durch keulenförmige Sporangien (Fig. 372), aus denen zahlreiche, mit zwei Zilien begabte Schwärmsporen nach außen entleert werden. Bei Saprolegnia umgeben sich diese mit endständigen Geißeln versehenen Sporen nach dem Schwärmen unter Einziehung ihrer Geißeln mit kugeliger Hülle, schlüpfen aber bald aus ihr von neuem aus, in anderer Gestalt, nämlich als bohnenförmige Schwärmer mit seitlicher Geißeleinfügung. Diese kommen schließlich zur Ruhe, werfen die Zilien nun ab und entwickeln sich zum Myzel. Bei anderen Gattungen tritt nur eine Form von Schwärmsporen auf. An älteren Myzelfäden entstehen die Geschlechtsorgane (Fig. 373, 374). Die Oogonien bilden mehrere oder viele Eizellen (bis 50), selten nur eine einzige aus. Sie enthalten anfangs viele Kerne, die aber zum größten Teile zugrunde gehen; die übrig bleibenden teilen sich nochmals mitotisch in Tochterkerne, von denen ein Teil wiederum degeneriert, während um die übrigen sich die stets einkernigen Eizellen abgrenzen. Die Antheridien enthalten ebenfalls mehrere, sich nochmals mitotisch teilende Kerne. Sie treiben einfache oder sich verästelnde Befruchtungsschläuche in die Oogonien bis zu den Eizellen, in die nun je ein männlicher Kern eintritt, um mit dem Eikern zu verschmelzen. Hierauf bilden sich die Eizellen zu derbwandigen Oosporen um, bei deren Keimung die Reduktionsteilung vollzogen wird. Bei einigen Formen dieser wie auch der vierten Familie kann die Bildung der Antheridien gelegentlich oder auch stets ausbleiben; die Eisporen reifen dann ohne Befruchtung (Fig. 373 op). Eine in Abwässern massenhaft vegetierende wasserreinigende Saprolegniacee ist Leptomitus lacteus, von dem nur Vermehrung durch Schwärmsporen bekannt ist.
3. Die Peronosporaceen[358] sind parasitische Pilze, deren Myzel in den Geweben höherer Landpflanzen lebt (Fig. 87). Gewisse Arten bewirken in nassen Jahren epidemische Erkrankungen von Kulturgewächsen, so vor allem die Phytophthora infestans, der um 1830 aus Amerika bei uns eingeschleppte Pilz der bekannten Kartoffelkrankheit (Kraut- und Knollenfäule). Seine Myzelfäden leben interzellular, senden kurze Saugschläuche oder Haustorien in die Zellen hinein und verursachen die Braunfärbung und das Absterben der von ihnen befallenen Organe. Bis jetzt sind bei dieser Art Geschlechtsorgane, die man bei Kultur des Pilzes auf gewissen Nährböden zur Entwicklung bringen kann, auf der Kartoffelpflanze selbst noch nicht beobachtet, sondern nur ungeschlechtliche Sporangien, die als ovale Gebilde auf verzweigten, vorzugsweise auf der Blattunterseite aus den Spaltöffnungen herauswachsenden Sporangienträgern gebildet werden (Fig. 375). Diese erscheinen dem bloßen Auge als weißer Schimmel. Die Sporangien werden endständig angelegt und durch eine Querwand abgegliedert; dann wächst der Träger neben dem Sporangium vorbei, so daß es eine seitliche Stellung erhält. Noch vor der Teilung des Inhaltes lösen sich die Sporangien (B) ab, werden durch den Wind verbreitet und tragen so zur raschen Ausbreitung der Epidemie bei. Die Entwicklung der Schwärmsporen aus den Sporangien erfolgt nur in Wasser, somit nur bei nassem Wetter. Der Sporeninhalt teilt sich in mehrere, mit zwei Zilien versehene, ausschlüpfende Schwärmsporen (C, D), die zu einem neuen, in das Blatt eindringenden Myzelfaden auskeimen. Die Sporangien können auch direkt ohne Teilung des Inhaltes und ohne Bildung von Schwärmsporen zu Keimschläuchen auswachsen. Es läßt sich somit bei dem Kartoffelpilz, wie auch bei anderen Peronosporeen eine Umbildung von Sporangien zu Konidien verfolgen, die hier mit dem Übergang von der aquatischen zur terrestrischen Lebensweise zusammenhängen dürfte.
Plasmopara viticola, mit reich verästelten Sporangienträgern, ist ein sehr schädlicher, aus Amerika stammender Parasit, der Pilz des falschen Mehltaues der Blätter und Beeren des Weinstockes. Eine sehr häufige Art ist Albugo candida (= Cystopus candidus) auf Cruciferen, besonders Capsella, weiße Auftreibungen der Stengel verursachend. Die Sporangien werden bei dieser Art in Ketten am Myzelium unter der Epidermis der Nährpflanze erzeugt und entleeren bei Regenwetter zahlreiche Schwärmsporen.
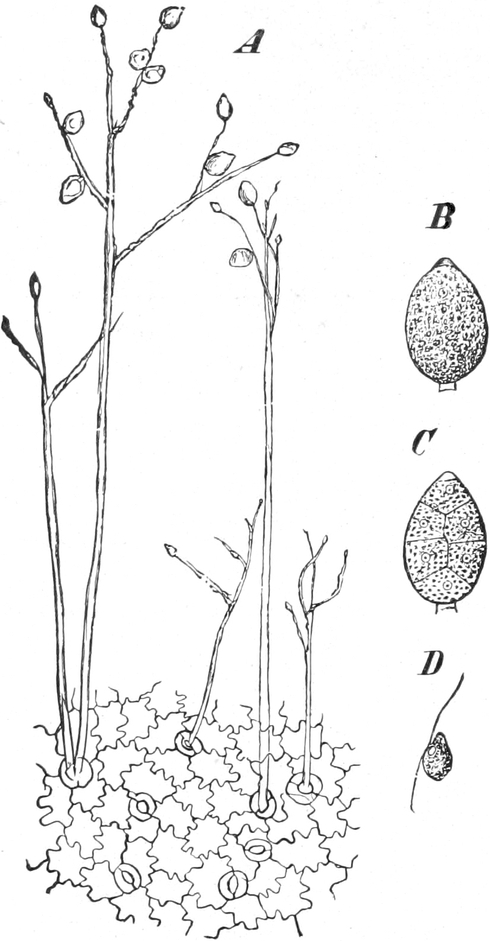
Fig. 375. A Blattepidermis von Solanum tuberosum mit Sporangienträgern der Phytophthora infestans. Vergr. 90. B Sporangium. C Ein solches mit geteiltem Inhalt. D Eine Schwärmspore. B–D Vergr. 540. Nach STRASBURGER.
Die Sexualorgane der Peronosporeen, die an Vaucheria (Fig. 350) erinnern, entstehen meist im Innern der Nährpflanze, die Oogonien als kugelige Anschwellungen von Hyphenenden, die Antheridien als schlauchförmige Ausstülpungen meist dicht unter den Oogonien (Fig. 376). Beide Organe werden durch Querwände abgegrenzt und enthalten viele Kerne, die dann eine einmalige Teilung erfahren. Im Verhalten der Kerne zeigen sich bei den einzelnen Arten interessante Verschiedenheiten. Bei Peronospora parasitica, Albugo candida und lepigoni, Pythium, Plasmopara, Sclerospora differenziert sich im Plasma des Oogoniums eine einzige große zentrale Eizelle oder Oosphäre, die im reifen Zustand nur einen Eikern in der Mitte enthält, während die übrigen Kerne sämtlich in dem peripherischen sog. Periplasma liegen. Die Antheridien treiben in das Oogonium einen Fortsatz, der sich an der Spitze in die Eizelle öffnet und nur einen männlichen Zellkern eintreten läßt. Die Oosphäre grenzt sich sodann durch eine Membran ab, die Kerne verschmelzen aber erst nach einiger Zeit, und das Periplasma wird zur Bildung der äußeren Sporenmembran, des Episporiums, verbraucht. Bei Peronospora parasitica ist die reife Oospore einkernig, bei Albugo durch Teilung des Keimkerns vielkernig. Albugo Bliti und A. Portulacae legen zwar ebenfalls eine zentrale Oosphäre, von Periplasma umgeben, an; sie enthält aber zahlreiche Kerne, und auch der Antheridiumschlauch führt zahlreiche Kerne in sie ein, die paarweise mit den weiblichen Kernen kopulieren. Aus dieser zusammengesetzten Eizelle geht dann eine vielkernige Oospore hervor. Das Verhalten beider Arten kann als ein ursprüngliches betrachtet werden, während die einkernigen Eizellen der zuerst genannten Vertreter sich von den vielkernigen ableiten lassen. Eine vermittelnde Stellung nimmt nun Albugo Tragopogonis ein, deren Eizelle zwar vielkernig angelegt ist, aber schließlich doch nur einen weiblichen Kern infolge Schwindens der übrigen enthält. Die überzähligen Kerne in den Oogonien und Antheridien können als funktionslos gewordene Gametenkerne betrachtet werden, ähnlich wie die überzähligen Eikerne bei gewissen Fucaceen. Die Oosporen keimen entweder direkt zu einem Myzelium aus oder erzeugen zunächst Schwärmsporen. Die Keimkerne in den Oosporen sind diploid; ihre erste Teilung, die schon vor der Keimung erfolgen kann, ist eine Reduktionsteilung.
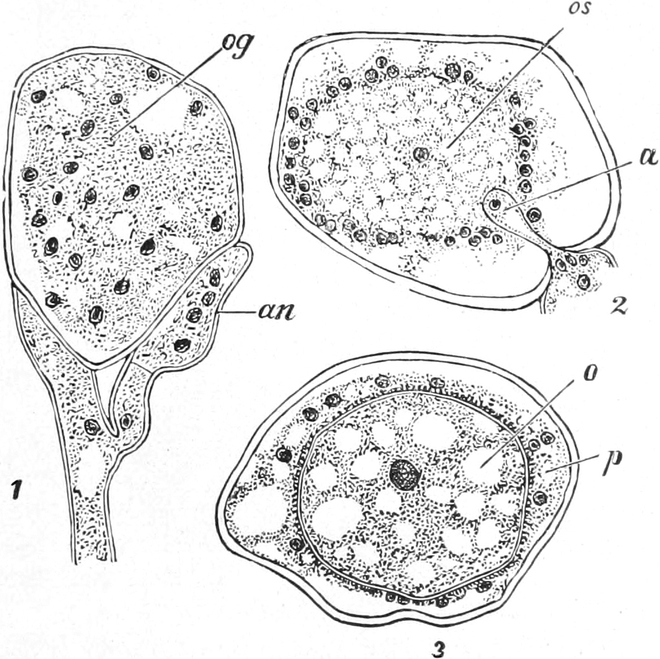
Fig. 376. Befruchtung der Peronosporeen. 1 Peronospora parasitica. Junges vielkerniges Oogonium og und Antheridium an. 2 Albugo candida. Oogonium mit der zentralen einkernigen Oosphäre und dem Befruchtungsschlauch a des Antheridiums, der den männlichen Kern einführt. 3 Desgl. Befruchtete Eizelle o umgeben von dem Periplasma p. Vergr. 666. Nach WAGER.
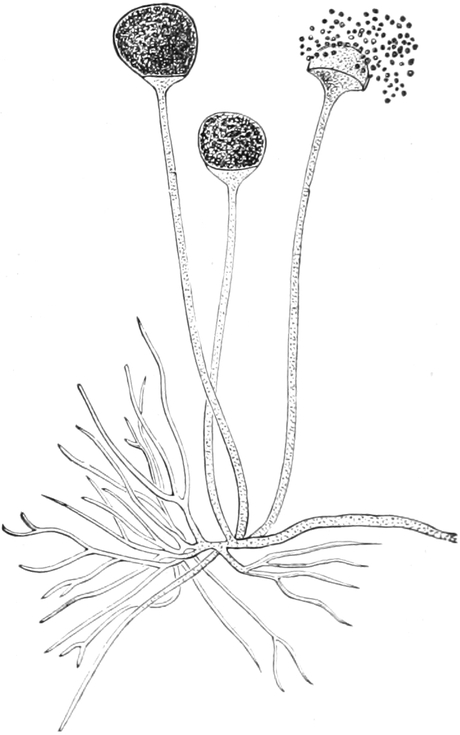
Fig. 377. Rhizopus nigricans. Teil eines Myzeliums mit Sporangien, das rechts befindliche die Sporen entleerend mit stehenbleibender, halbkugeliger Columella. Vergr. 38.
3. Ordnung. Zygomycetes.
Zu der ersten Familie, den Mucoraceen[359] gehören terrestrische Schimmelpilze, die auf pflanzlichen und tierischen Stoffen saprophytisch vegetieren. Die ungeschlechtliche Vermehrung geschieht durch unbewegliche behäutete Sporen aus Sporangien oder durch Konidien. Die sexuelle Fortpflanzung besteht in der Kopulation zweier gleichwertiger Cönogameten zu einer Zygospore.
Eine der verbreitetsten Arten ist der Kopfschimmel, Mucor mucedo, dessen Myzel weiße Schimmelrasen auf feuchtem Brot, Mist, Fruchtsäften bei Abschluß von frischer Luft bildet, ferner auf gleichen Substraten der Ausläufer treibende Mucor stolonifer (= Rhizopus nigricans) mit bräunlichem Myzelium. Bei den Mucor-Arten entstehen die kugeligen Sporangien (Fig. 377) an den Enden von senkrecht sich erhebenden Myzelschläuchen durch Abgrenzung mittels Querwand, die sich kegelförmig als sog. Columella (Fig. 378) in das Sporangium vorwölbt. Das Plasma des Sporangiums zerfällt durch fortgesetzte Zerklüftung in zahlreiche Sporen, die durch Zerfließen der Sporangienwandung unter Aufquellen einer zwischen ihnen liegenden Zwischensubstanz entleert werden. Bei den auf Mist häufig sich entwickelnden Pilobolus-Arten wird das Sporangium durch den stark turgeszierenden und unterhalb der Columella schließlich aufplatzenden Träger weit abgeschleudert. (Vgl. S. 308.) Nach HARPER sind bei Pilobolus die Sporen zweikernig, bei Sporodinia vielkernig (Fig. 379).
Unter gewissen Bedingungen wird die ungeschlechtliche Fortpflanzung abgelöst durch die sexuelle, die darin sich zeigt, daß an den Myzelschläuchen keulenförmige Äste hervorkommen, paarweise mit den Enden aufeinander stoßen (Fig. 380) und dann erst dort die vielkernigen Cönogameten durch je eine Querwand abgrenzen. Die Gameten verschmelzen nun zu einer Zygospore mit warzenbesetzter Membran. Über das Verhalten der Kerne bei der Kopulation liegen bis jetzt nur wenige Angaben vor. Bei Sporodinia, Phycomyces und anderen Gattungen kopulieren die in die Zygospore eintretenden Gametenkerne paarweise miteinander. Die Zygosporen keimen nach längerer Ruhe; in der Regel schließen die Keimschläuche ihre Entwicklung mit der Bildung von Sporangien ab (Fig. 380, 5). Die Reduktionsteilung soll nach BURGEFF bei Phycomyces in der Anlage des Sporangiums, das den aus der Zygospore hervorgehenden Keimschlauch abschließt, stattfinden.
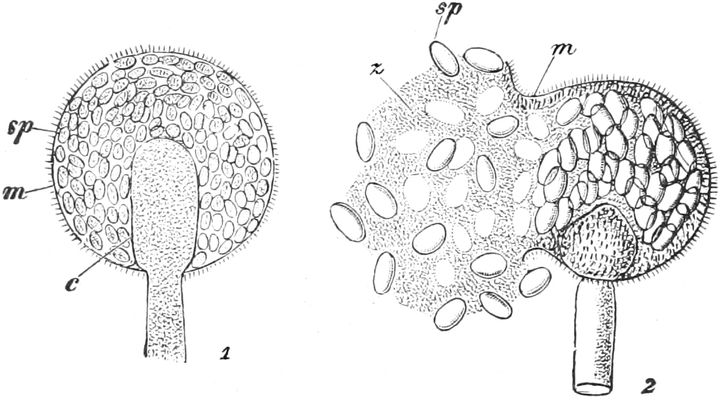
Fig. 378. 1 Mucor mucedo. Sporangium im optischen Längsschnitt, c Columella, m Membran, sp Sporen. 2 Mucor mucilagineus. Sporangium in der Sporenentleerung begriffen, die Membran m zerfließend, die Zwischensubstanz z stark aufquellend. 1 Vergr. 225. 2 Vergr. 300. Nach BREFELD. Aus V. TAVEL, Pilze.
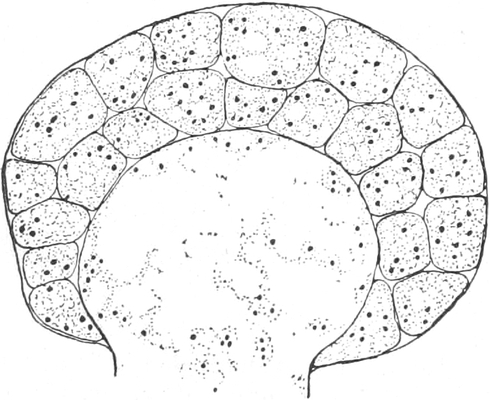
Fig. 379. Sporodinia grandis. Schnitt durch ein reifes Sporangium. Sporen mehrkernig. Vergr. 425. Nach HARPER.
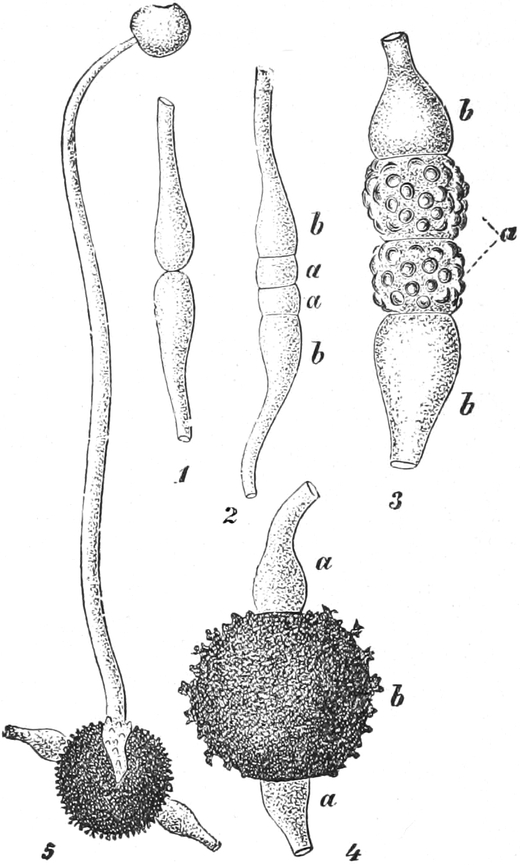
Fig. 380. Zygosporenbildung von Mucor mucedo. 1 Die Konjugationsäste. 2 Abgrenzung der Gameten a von den Suspensoren b. 3 Weiteres Stadium, die Warzen der Membran beginnen ihre Bildung. 4 Reife Zygospore b zwischen den Suspensoren a. 5 Keimung der Zygospore mit einem Sporangium. 1–4 Vergr. 225, 5 Vergr. ca. 60. Nach BREFELD. Aus V. TAVEL, Pilze.
Interessant ist der von BLAKESLEE für die meisten Mucorineen erbrachte Nachweis von diözischen (heterothallischen) Myzelien, so bei Mucor Mucedo und Rhizopus nigricans; Zygosporen werden nur dann gebildet, wenn solche mit + und - bezeichneten Myzelien, die zwar äußerlich nicht unterscheidbar, physiologisch aber verschieden differenziert sein müssen, aufeinander stoßen. Bei einigen Mucorineen (Sporodinia grandis) dagegen entstehen die kopulierenden Gameten auf ein- und demselben, also homothallischen Myzelium. Bei sonst heterothallischen Arten, wie Phycomyces nitens, können unter gewissen Umständen homothallische Myzelien auftreten oder auch neutrale, die nur Sporangien bilden[360].
Innerhalb der Gruppe der Zygomyceten ist eine Rückbildung der Sexualität zu verfolgen: Bei gewissen Mucorineen werden zwar die Konjugationsschläuche paarweise angelegt; es findet aber keine Verschmelzung mehr statt, sondern die Endzellen bilden sich direkt zu Sporen aus, die man dann als Azygosporen bezeichnet; endlich bei anderen Formen werden die an ihren Enden Azygosporen bildenden Schläuche einzeln am Myzelium angelegt. Bei vielen Arten stellt sich die Zygosporenbildung nur selten ein.
Bei Mucor mucedo unterliegt die Größe und die Sporenzahl der Sporangien auffallenden Schwankungen. Bei der Gattung Thamnidium hat sich ein Dimorphismus der Sporangien ausgebildet, ein größeres vielsporiges steht am Ende des Trägers und eine größere Anzahl keiner, wenigsporiger, sog. Sporangiolen, an wirtelig verzweigten Seitenästen des Trägers. Letztere können sogar unter bestimmten Ernährungsbedingungen einzellig bleiben und auf diese Weise zu Konidien werden. Bei der tropischen Gattung Choanephora ist der Dimorphismus am weitesten gegangen, indem hier neben den großen Sporangien auf besonderen Trägern Konidien erzeugt werden. Endlich gibt es Zygomyceten (z. B. Chaetocladium), bei denen ausschließlich Konidien als ungeschlechtliche Fruktifikation auftreten. So lassen sich also in derselben Pilzgruppe alle Übergänge vom vielsporigen Sporangium bis zur einzelligen Konidie feststellen.
Rhizopus nigricans enthält in seinem Zellsaft ein auf Tiere tödlich wirkendes Gift[361].
2. Die Familie der Entomophthoraceen[362] stellt eine kleine Gruppe meist parasitisch in den Leibern von Insekten und Raupen lebender Pilze vor, deren vielkernige, meist verzweigte Myzelschläuche einzellig bleiben oder später in Zellen sich zergliedern, die dann im Blut durch den ganzen Tierkörper verbreitet werden. Sie vermehren sich ungeschlechtlich durch vielkernige oder einkernige Konidien, die einzeln an den Enden der Myzeläste entstehen und bei der Reife abgeschleudert werden, geschlechtlich durch Zygosporen, an deren Stelle aber auch häufig Azygosporen gebildet werden.
Am bekanntesten ist Empusa Muscae, der Schimmelpilz der Stubenfliege (Fig. 381). Die abgeschleuderten, vielkernigen Konidien umgeben die Fliegen, die durch den Pilz infiziert und getötet wurden, mit einem weißen Hofe, der besonders auffällt, wenn die Fliegen an Fensterscheiben haften.
3. Basidiobolaceen[363]. Basidiobolus ranarum, ein auf Froschmist saprophytischer Pilz, muß von der vorhergehenden Gruppe abgetrennt werden. Sein verzweigtes Myzel ist vielzellig, die einzelnen Zellen enthalten je einen großen Kern. Die im reifen Zustand abgeschleuderten, einkernigen Konidien entstehen einzeln an ihren Tragzellen. Eigenartig verläuft die Bildung der Zygosporen. Zwei benachbarte Zellen eines Fadens schwellen an und kopulieren, nachdem sie vorher zwei schnabelartige Fortsätze getrieben und diese durch Querwände als vergängliche und bei der Kopulation nicht beteiligte Zellen abgegrenzt haben. In der Zygospore teilen sich die beiden Gametenkerne in vier Kerne, von denen ein Paar zugrunde geht, das andere Paar aber verschmilzt. In diesen Vorgängen und auch in der Struktur der Zellkerne zeigen sich Ähnlichkeiten mit Konjugaten.
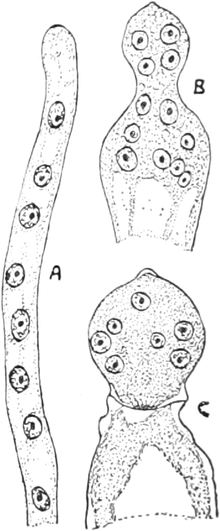
Fig. 381. Empusa Muscae. A Myzelschlauch aus einer Fliege. B Junger, aus solchem Schlauch entstandener und nach außen hervorgebrochener Konidienträger. C Bildung der Konidie, in welche die zahlreichen Kerne des Trägers hineingewandert sind. Vergr. 450. Nach OLIVE.
Zu dieser ungemein formenreichen Klasse gehören zwei große Gruppen terrestrischer Pilze, die Askomyceten und die Basidiomyceten, über deren phylogenetische Ableitung noch Unsicherheit herrscht. Es ist versucht worden, sie von den Phykomyceten abzuleiten; indessen spricht nicht nur die Beschaffenheit des Thallus dagegen, sondern auch der Bau der Sexualorgane und die Entwicklung der Fruchtkörper, die im besonderen bei den Askomyceten einige Beziehungen zu den Rotalgen zeigen, während zu den Grünalgen keinerlei Anknüpfungspunkte erkennbar sind. Die Basidiomyceten lassen sich durch eine ihrer einfacheren Ordnungen, die der Uredineen oder Rostpilze, auf die Askomyceten zurückführen. Andererseits scheinen die Basidiomyceten durch eine ihrer einfacheren Ordnungen, die der Uredineen oder Rostpilze, mit den Askomyceten verknüpft zu sein.
Wie bei den Phykomyceten besteht der vegetative, an saprophytische oder parasitische Lebensweise vortrefflich angepaßte Thallus der Eumyceten aus reichverzweigten, farblosen Zellfäden oder Hyphen, deren Gesamtheit als Myzelium (Fig. 86) bezeichnet wird. Die Hyphen sind aber gegliedert, sie bestehen aus Zellreihen. In diesen weisen die einzelnen Zellen eine meist dünne, chitinhaltige Membran auf und in ihrem farblosen Plasma winzige Zellkerne, die oft zu mehreren (Fig. 6), doch in bestimmten Fällen zu zweien oder auch nur in Einzahl vertreten sind. Die Zellen enthalten keine Chromatophoren und nie echte Stärke, an deren Stelle vielmehr Glykogen, oft in sehr beträchtlicher Menge, und Fett treten. Die Hyphen durchziehen das Substrat und entnehmen ihm die für ihren Aufbau erforderlichen Substanzen. Bei manchen Pilzen bilden sie durch reiche Verzweigung Gewebekörper (Flechtgewebe oder Plektenchym). Wenn die Fäden dabei dicht zusammenlagern und sich in kurze Zellen teilen, so entsteht ein dem echten Parenchym überaus ähnliches Gewebe (Pseudoparenchym) (Fig. 36), das bei gewissen Arten erzeugt wird, wenn sie aus ihren Myzelien vegetative Ruhezustände, sog. Sklerotien bilden; diese sind knollige oder strangartige feste Körper, die unter bestimmten Bedingungen wieder auskeimen. Ferner bestehen die Fruchtkörper aus lockerem oder dichterem Flechtgewebe (Fig. 37).
Gewisse Fadenpilze bilden an den Wurzeln humusbewohnender grüner Pflanzen die weit verbreiteten Mykorrhizen (S. 226). Die Bestimmung der hier in Betracht kommenden Pilzarten, die wohl beiden Unterklassen entstammen, ist nur auf experimenteller Grundlage sicher zu stellen. Von MELIN wurde auf diese Weise nachgewiesen, daß Boletus-Arten (S. 406) Mykorrhizen an Kiefern und Lärchen liefern[354].
Die beiden Unterklassen unterscheiden sich durch die Art der ungeschlechtlichen Sporenbildung. Für sämtliche Askomyceten ist der Askus charakteristisch, ein keulenförmiger Sporenschlauch, der eine bestimmte Zahl von Sporen (meist 8) in eigenartiger Weise durch freie Zellbildung erzeugt (Fig. 382), während die Basidiomyceten an Stelle des Askus die Basidie aufweisen, die von verschiedener Gestalt, entweder schlauchförmig einzellig oder vierzellig die Sporen in bestimmter Zahl (meist 4) durch Zellsprossung abgliedert (Fig. 398, 399, 401, 402, 404, 411).
Die Schlauchpilze besitzen in ihren typischen Vertretern Sexualorgane, Oogonien, die hier als Askogone oder wie bei den Rotalgen als Karpogone bezeichnet werden, und Antheridien. Nur für eine geringe Zahl von Gattungen sind die Sexualorgane näher untersucht; sie zeigen eine auffallende Mannigfaltigkeit in ihrer Gestaltung. Unter Hinweis auf die spezielle Darstellung seien hier nur einige Typen kurz erwähnt.
1. Bei den Laboulbenieen (Fig. 397) zeigen das Karpogon mit seinem Trichogyn und die Antheridien, von denen Spermatien gebildet werden, große Ähnlichkeit mit den gleichnamigen Gebilden der Rotalgen.
2. Die Flechten bildenden Askomyceten (Fig. 431, 432) schließen sich am nächsten an die erstgenannte Gruppe an; ihr Karpogon ist aber ein schraubig gewundener, vielzelliger Faden mit Trichogyn; die Spermatien werden in besonderen krugförmigen Einsenkungen des Thallus, den Spermogonien, erzeugt. Auch bei einigen nicht flechtenbildenden Schlauchpilzen kommen solche Organe vor.
3. Einem anderen Typus folgen Pyronema[372] (Fig. 391) und verwandte Gattungen, Ascodesmis (= Boudiera CLAUSSEN)[372], Monascus[366], Aspergillus[369], bei denen die Befruchtung eines vielkernigen, mit Trichogyn versehenen Karpogons durch ein vielkerniges Antheridium stattfindet, die beide als Cönogameten (S. 377) zu bezeichnen wären. Hier schließt sich auch Lachnea[367] an.
4. Bei den Erysibeen (Fig. 383) kopuliert ein einkerniges Antheridium direkt mit einem einkernigen Oogonium.
Andere Gattungen weisen in der Gestaltung der Karpogone und Antheridien Übergänge von dem Verhalten der Flechtenpilze zu dem von Pyronema und dem der Erysibeen auf, so daß wir vielleicht erstere als primitive, letztere als reduzierte Schlauchpilze betrachten können[365].
Bei gewissen Schlauchpilzen sind die Sexualorgane zwar noch vorhanden, aber eine Befruchtung der Karpogone findet nicht mehr statt, oder sie sind mehr oder weniger rückgebildet. Öfters kommt es vor, daß Antheridien nicht mehr ausgebildet werden.
Das Karpogon liefert nicht eine ruhende Oospore, sondern verbleibt im Zusammenhange mit der Mutterpflanze und läßt askogene Zellfäden aussprossen, die sich verzweigen und schließlich an ihren Enden die Sporenschläuche oder Asci bilden. Die aus einem Karpogon, in gewissen Fällen auch aus einer Gruppe benachbarter Karpogone hervorgegangenen Fäden und Asci vereinigen sich zu einem Fruchtkörper, an dessen Zusammensetzung und Umhüllung auch vegetative, dem Myzel der Mutterpflanze entsprossene und stets von den askogenen scharf geschiedene Zellfäden sich beteiligen. Das die Geschlechtsorgane erzeugende, aus den Askosporen hervorgegangene Myzel stellt die geschlechtliche Generation (Gametophyt) vor, das aus dem Karpogon hervorgegangene, in den Sporenschläuchen endigende Fadensystem dagegen die ungeschlechtliche (Sporophyt).
In oder an den Fruchtkörpern gewisser Gruppen der Schlauchpilze stehen die Asci parallel nebeneinander in einer Schicht (Hymenium), und zwischen ihnen finden sich in der Regel Saftfäden (Paraphysen), die dem sterilen Fadensystem der Fruchtkörper entstammen.
Bei einigen Ordnungen der Schlauchpilze fehlen die Sexualorgane und Fruchtkörper, vielleicht infolge von Rückbildung, vollständig; die Asci entstehen dann direkt aus den Myzelien.
Der Askus geht aus der endständigen Zelle eines askogenen Fadens hervor, die bei ihrer Anlage zwei Kerne mitbekommt. Beide Kerne verschmelzen miteinander, und aus dem Verschmelzungsprodukt gehen dann durch dreimalige Teilung acht Kerne hervor, um die sich auf dem Wege freier Zellbildung nach der in Fig. 21 dargestellten Weise die acht Sporen mittels Membranen abgrenzen (Fig. 382 und 392).
Im Gegensatz zu den Sporangien der Phykomyceten wird nicht das gesamte Plasma des Sporenschlauches zur Bildung der Askosporen verbraucht; diese liegen vielmehr meist in einer Längsreihe angeordnet in dem übriggebliebenen glykogenhaltigen Periplasma.
Das Ausstäuben der Sporen geschieht bei den Ordnungen der Diskomyceten und Pyrenomyceten aktiv infolge Verquellens des Epiplasmas, wodurch die Sporen aus den Schläuchen einige Millimeter weit herausgeschleudert werden. Bei ersterer Ordnung erfolgt sie als Wirkung des Reizes, den Licht- und Wärmestrahlen auf das Hymenium ausüben. Die Sporen werden durch aufsteigende Luftströmungen verbreitet. Bei den übrigen Askomyceten werden die Sporen durch Zerfall der Fruchtkörper frei[367].
In seltenen Fällen teilen sich die acht Kerne vor der Abgrenzung ihrer Zellen weiter; so entstehen zahlreiche freie Askussporen, bei Thecotheus z. B. 32; häufiger aber vollziehen sich Teilungen der acht Zellen nach dieser Abgrenzung und führen zur Bildung von acht zwei- oder mehrzelligen Sporenkörpern an Stelle von acht Einzelsporen.
Das Verhalten der Sexualkerne bei und nach der Befruchtung der Karpogone ist nur für wenige Fälle sicher erkannt. Für einige Askomyceten (Pyronema, Monascus) ist in neuerer Zeit festgestellt, daß im Karpogon die Sexualkerne sich nur dicht nebeneinander lagern, daß sie sich in den askogenen Fäden konjugiert weiterteilen und daß erst in der Askusanlage die Abkömmlinge je eines männlichen und je eines weiblichen Kerns miteinander verschmelzen. So erscheint die Kopulation der Sexualkerne vom Karpogon in den Askus hinausgeschoben und der Befruchtungsvorgang in zwei Stadien zerlegt.
Soweit sich aus den bisherigen Angaben schließen läßt, scheint bei den Schlauchpilzen allgemein die Reduktion der Chromosomen nach der Vereinigung der beiden Kerne in der Askusanlage bei der ersten Teilung des Fusionskerns sich abzuspielen.
In dem Entwicklungsgange der Schlauchpilze tritt vor der Fruchtkörperbildung vielfach noch eine ungeschlechtliche Vermehrung mittels Konidien auf; diese sind behäutete Sporen, die durch Zellsprossung an den Enden einfacher oder verzweigter Hyphenäste, der Konidienträger (z. B. Fig. 385), entstehen und sich abgliedern.
Von zahlreichen Fadenpilzen ist bis jetzt nur solche Konidienvermehrung bekannt, nicht aber die Askusfrüchte. Man bezeichnet sie daher als Fungi imperfecti, wobei die Frage offen steht, ob nicht in gewissen Fällen die Askusbildung ganz in Wegfall gekommen ist.
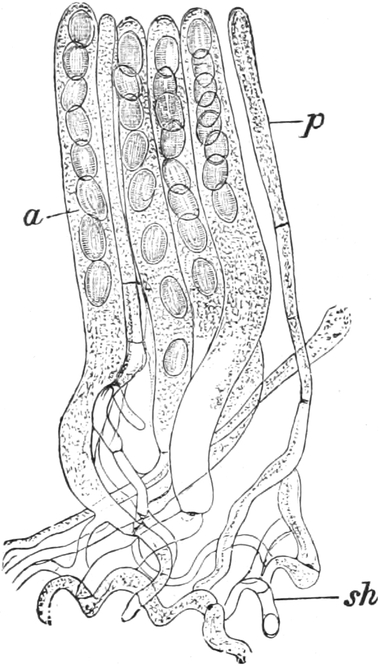
Fig. 382. Teil des Hymeniums von Morchella esculenta. a Asci, p Paraphysen, sh subhymeniales Gewebe. Vgr. 240. Nach STRASBURGER.
Nach der Beschaffenheit der Fruchtkörper unterscheiden wir zunächst die Ordnungen der Erysibeen, Plectascineen und Pyrenomyceten mit geschlossenen oder mit krugförmigen Fruchtkörpern (Perithecium), der Discomyceten mit offenen Fruchtkörpern (Apothecium), der Tuberineen mit anfangs offenen, später fast geschlossenen Fruchtkörpern.
Diesen Ordnungen reihen wir die Exoasceen an, bei denen die Asci ohne Fruchtkörperbildung aus den Hyphenzellen hervorgehen, ferner die sehr einfachen Saccharomyceten oder Hefepilze. Beide Gruppen können als reduzierte Askomyceten aufgefaßt werden.
Die Laboulbenieen endlich, deren Asci in kleinen Perithecien eingeschlossen sind, nehmen eine isolierte Stellung ein.
Die verwandtschaftlichen Beziehungen dieser Ordnungen zueinander sind noch nicht geklärt.
1. Ordnung. Erysipheae, Mehltaupilze[296],[352],[368]. Die kleinen kugeligen Perithecien besitzen eine geschlossene Hülle (Peridie), die schließlich unregelmäßig aufplatzt und die Askosporen entläßt. Die Asci stehen im Zentrum der Frucht in Einzahl oder zu mehreren büschelig angeordnet.
Die Mehltaupilze überziehen als Parasiten die Blätter höherer Pflanzen spinnwebartig und entsenden aus ihren Hyphen Haustorien oder Saugfortsätze in die Epidermiszellen. In einzelnen Fällen lebt das Myzel auch interzellulär im Blattgewebe. Die Perithecien sind in den weißen Überzügen als kleine, mit eigentümlichen Anhängseln versehene, kugelige, schwarze Körperchen zu erkennen. Im einfachsten Falle (z. B. bei der Gattung Sphaerotheca) umschließt das Perithecium nur einen einzigen Askus mit acht Sporen, der von sterilen Hyphen oder Hüllfäden in mehreren Schichten dicht umwachsen ist. Bei den Gattungen Erysibe und Uncinula dagegen finden sich in jedem Perithecium mehrere, bei Phyllactinia 12 bis 25 Asci vor. Die Zahl der Sporen beträgt meist vier oder auch nur zwei, indem nicht alle acht Kerne des Askus zur Sporenbildung verwendet werden. Wie HARPER nachgewiesen hat, besteht die erste Anlage des Peritheciums aus einem Oogonium und einem Antheridium. Beide werden an Hyphenästen als einkernige Sexualzellen abgegrenzt, stehen dicht nebeneinander, und der männliche Kern tritt durch ein Loch in der Zellwand in das Oogon über (Fig. 383, 1–4). Nach der Befruchtung wird das Oogonium von Hüllfäden, die aus seiner Stielzelle oder auch aus derjenigen des Antheridiums entspringen, umgeben (5) und zu einem mehrzelligen Gebilde weiterentwickelt (6), aus dessen vorletzter, zweikerniger Zelle bei Sphaerotheca nach vorausgegangener Kernvereinigung und Reduktionsteilung der achtsporige Askus entsteht, während bei Erysibe und bei Phyllactinia diese Zelle ausschließlich oder wenigstens vorwiegend askogene Schläuche treibt, die ihrerseits die hier in Mehrzahl vorhandenen Asci bilden. Die Mehltaupilze vermehren sich, bevor sie zur Peritheciumbildung übergehen, zunächst durch Konidien, die an kleinen aufrechten Myzelzweigen in Form von Ketten von der Spitze nach abwärts fortschreitend, abgegliedert und durch den Wind verbreitet werden.
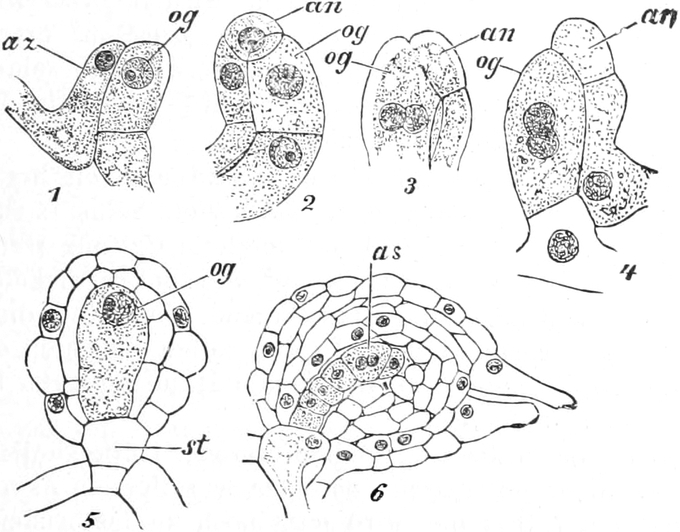
Fig. 383. Sphaerotheca Castagnei. 1 Oogonium og und Antheridiumzweig az. 2 Abgrenzung des Antheridiums an. 3 Übertritt des Antheridiumkernes zum Oogoniumkern. 4 Befruchtetes Oogonium, in 5 mit zwei Lagen Hüllfäden aus der Stielzelle st. 6 Mehrzelliges Askogon durch Teilung des Oogoniums hervorgegangen, die vorletzte zweikernige Zelle, as, liefert den Ascus. Nach HARPER.
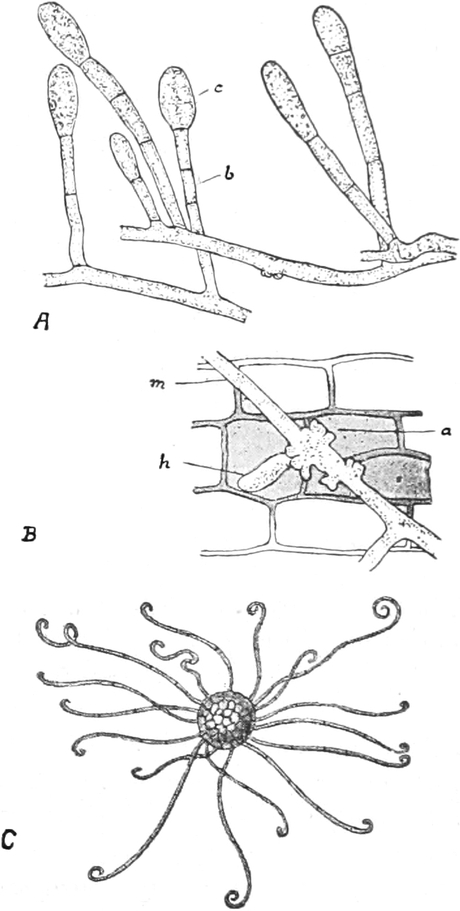
Fig. 384. Uncinula necator. A Konidienbildung, c Konidie, b Konidienträger. B Myzelfaden m, der auf Epidermiszellen die Anheftungsscheiben a und ein Haustorium h gebildet hat. C Perithecium mit Anhängseln. Aus SORAUER, LINDAU, REH. Handb. der Pflanzenkrankheiten, II1, S. 246, 1921.
Der auf Blättern und Beeren von Vitis in Amerika, seit 1845 auch in Europa erschienene, sehr schädliche Mehltau des Weinstocks ist die als Oidium Tuckeri bezeichnete Konidienfruktifikation von Uncinula necator (= U. spiralis), deren Perithecien mit an der Spitze spiralig eingerollten Anhängseln versehen sind. Sie erscheinen nur selten bei uns, während sie in Nordamerika regelmäßig im Spätherbst auftreten (Fig. 384). Auch der bei uns seit 1907 sehr verbreitete Eichenmehltau, Microsphaera quercina vermehrt sich hauptsächlich durch Konidien und erzeugt nur sehr selten die Perithecien, deren lange Anhängsel an der Spitze mehrfach gegabelt sind.
2. Ordnung. Plectascineae. Die Perithecien sind rundlich, haben eine geschlossene Peridie und enthalten die Asci im Innern in unregelmäßiger Anordnung.
1. Aspergillaceae[369]. Fruchtkörper klein, nicht unterirdisch. Hierher gehören zwei der gemeinsten Schimmelpilze, Aspergillus (Eurotium) herbariorum und Penicillium crustaceum, die saprophytisch auf organischen Stoffen leben. Beide vermehren sich anfangs in reichlichem Maße nur durch Konidien, bevor sie zur Bildung der Perithecien übergehen.
Die Konidien von Aspergillus herbariorum sind unter dem Namen Gießkannenschimmel bekannt; sein Konidienträger zeigt am oberen Ende eine kugelige Anschwellung, von der radial angeordnete Konidienketten entspringen (Fig. 385). Die Träger stehen reihenweise nebeneinander und erscheinen als anfangs weißer, später blaugrüner Schimmel auf feuchten Vegetabilien, Früchten, Brot usw. Einige Arten von Aspergillus können auch als pathogene Pilze Erkrankungen bei Wirbeltieren und Menschen hervorrufen, so bewirkt A. fumigatus, der in gärenden Heuhaufen vorkommt und bei 40° C sein Temperaturoptimum erreicht[370], die Mykosen des Ohrgangs, des Rachens und der Lunge.
Die ebenfalls blaugrünen Schimmelrasen von Penicillium crustaceum, dem überall verbreiteten Pinsel- oder Brotschimmel, bestehen dagegen aus verzweigten Konidienträgern (Fig. 385). Penicillium brevicaule, auf modrigem Papier vorkommend, wird zum Nachweis von Arsen benutzt, da es auf arsenhaltigen Substraten (Tapeten) in seinem Stoffwechsel das stark riechende Diäthylarsin abscheidet.
Die Perithecien von Aspergillus und Penicillium erscheinen später am Myzel, bei letzterer Gattung treten sie nur selten auf. Sie sind verwickelter gebaut als bei den Erysibeen. In ihrer ersten Anlage sind Sexualorgane, ein Antheridium und ein mit Trichogyn versehenes Karpogon, nachgewiesen. In den reifen Früchten erscheinen die Schlauchwandungen und das sterile, die Asci umgebende Hyphengewebe bis auf die unregelmäßig aufplatzende Fruchtwand aufgelöst.
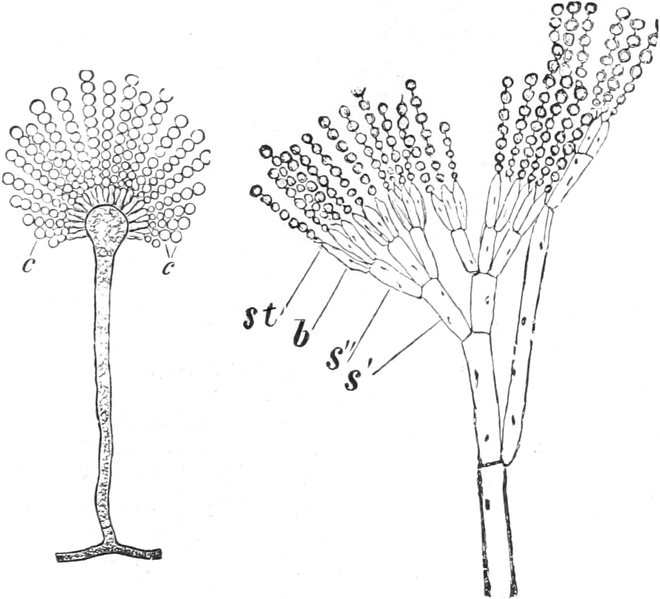
Fig. 385. Konidienträger von Aspergillus herbariorum (links), von Penicillium crustaceum (rechts).
2. Die Elaphomycetaceae besitzen unterirdische, knollenförmige, trüffelähnliche Fruchtkörper, deren Peridie gegen den zu einer pulverigen Sporenmasse reifenden Askuskomplex scharf abgesetzt ist. Offizinell war früher und wird jetzt noch zu Tierarzneien gebraucht die in Nadelwäldern Europas häufige Hirschtrüffel, Elaphomyces cervinus (Boletus cervinus) mit walnußgroßen, gelbbraunen, bitter schmeckenden Fruchtkörpern.
3. Die Terfeziaceae unterscheiden sich von den vorigen durch eine nicht scharf abgesetzte Peridie ihrer Fruchtkörper. Hierher gehören die besonders im Mittelmeergebiet verbreiteten Terfezia-Arten mit eßbaren trüffelähnlichen Fruchtkörpern.
3. Ordnung. Pyrenomycetes, Kernpilze. Außerordentlich formenreiche Gruppe von Pilzen, die teils parasitisch auf Pflanzenteilen, teils saprophytisch auf faulem Holz, Mist usw. leben. Einige wenige Gattungen befallen parasitisch verschiedene Insektenlarven. Die Pyrenomyceten charakterisieren sich durch die krugförmige Gestalt ihrer Askusfrüchte oder Perithecien, die an ihrer Spitze eine offene Mündung und in ihrem Grunde ein Hymenium aus Sporenschläuchen und haarförmigen, oft verzweigten Saftfäden oder Paraphysen (Fig. 386) besitzen. Die Seitenwände des Peritheciums sind bis zur Mündung ausgekleidet mit ähnlichen Hyphenhaaren, den Periphysen. Die Askosporen werden aus der Mündung nach außen entleert.
Die einfachsten Pyrenomyceten besitzen freie, dem Myzel aufsitzende, meist schwarz gefärbte, kleine Perithecien (Fig. 386), so die Gattungen Sphaeria und Podospora. Bei anderen Kernpilzen aber erscheinen die Perithecien zu mehreren oder vielen dicht nebeneinander eingebettet in einen rundlichen, polsterförmigen oder keulenförmigen, zuweilen verzweigten Myzelkörper von pseudoparenchymatischer Struktur. Man bezeichnet diesen als Stroma.
Der Peritheciumbildung gehen in dem Entwicklungsgang der meisten Kernpilze mannigfaltige Nebenfruktifikationen, hauptsächlich Konidien voraus, die in verschiedener Weise von den Myzelfäden teils direkt, teils auf besonderen Trägern abgegliedert werden und zur Ausbreitung des Pilzes beitragen. Häufig erscheinen die Konidienträger zu Fruchtkörpern vereinigt. Eine besondere Form solcher Früchte sind die bei manchen Gattungen auftretenden Pykniden, kleine kugelige oder flaschenförmige Gebilde, die als Auskleidung verzweigte Hyphenfäden besitzen, an deren Spitzen die Konidien, hier Pyknosporen (oder Pyknokonidien) genannt, abgegliedert werden (Fig. 387). Die Pykniden und ihre Sporen stimmen in ihrer Bildung mit den Spermogonien und Spermatien der Flechtenpilze überein und mögen wohl auch als die ursprünglichen männlichen Organe der Askomyceten zu betrachten sein.
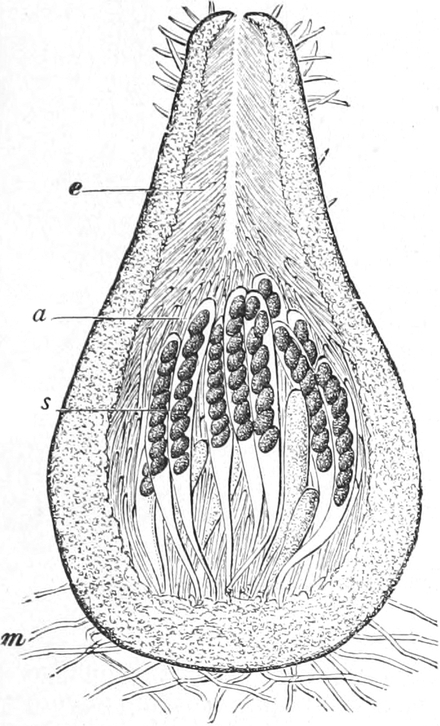
Fig. 386. Perithecium von Podospora fimiseda im Längsschnitt. s Die Asci, a die Paraphysen, e die Periphysen, m Myzelfäden. Vergr. 90. Nach V. TAVEL.
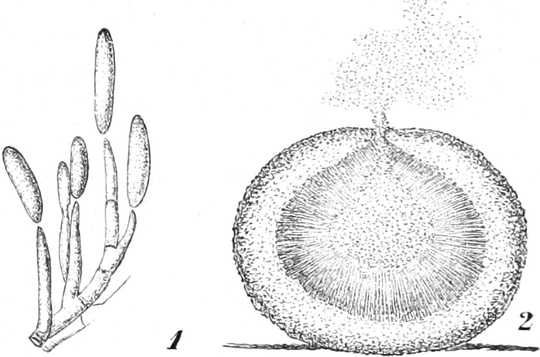
Fig. 387. 1 Konidienabschnürung an den Konidienträgern aus der Pyknide von Cryptospora hypodermia. Vergr. 300. Nach BREFELD. 2 Pyknide von Strickeria obducens, im Durchschnitt. Vergr. 70. Nach TULASNE. Aus V. TAVEL, Pilze.
Wichtig als offizinelles Gewächs und als Schädling der Roggenfelder ist Claviceps purpurea, der Pilz des Mutterkorns. Er lebt parasitisch in den jungen Fruchtknoten von Gramineen, hauptsächlich des Roggens. Diese werden im Frühsommer durch die Askosporen infiziert. Das Myzel überwuchert die Fruchtknoten und geht bald zur Bildung von Konidien über, die auf kurzen seitlichen Trägern in kleinen Köpfchen vereinigt abgegliedert werden (Fig. 388 A). Zugleich findet Ausscheidung eines süßen Saftes statt, mit dem die massenhaft erzeugten Konidien zu Tropfen zusammenfließen. Dieser sog. Honigtau des Getreides wird von Insekten aufgesucht, auf andere Blüten übertragen und so der Pilz verbreitet. Das Myzel geht nach Aufzehrung des Fruchtknotengewebes schließlich in ein Sklerotium über, dadurch, daß die Hyphenfäden dicht zusammenwachsen und namentlich an der Peripherie unter Querteilung ein geschlossenes Pseudoparenchym bilden (Fig. 36). Diese langgestreckten, schwarzviolett gefärbten, aus der Kornähre mit schwach hornförmiger Krümmung hervorragenden Sklerotien werden als Mutterkorn, Secale cornutum, bezeichnet (Fig. 388 B). Die mit Reservestoffen (Fett) dicht angefüllten Sklerotien fallen zu Boden und keimen erst im nächsten Frühsommer zur Zeit der Roggenblüte. Es kommen Hyphenbündel aus ihnen hervor, die zu langgestielten, blaßrot gefärbten Köpfchen heranwachsen (C). In letzteren werden zahlreiche eingesenkte Perithecien, gleichmäßig über die Oberfläche verteilt, erzeugt (D, E). Jedes Perithecium enthält eine Anzahl Asci mit acht langen, fadenförmigen Askosporen, die aus der Mündung hervorgepreßt werden und, durch den Wind verbreitet, auf die Grasähren gelangen.
Nectria galligena, ein sehr schädlicher Parasit in der Rinde einiger Laubbäume, besonders Apfel- und Birnbaum, verursacht den sog. Krebs der Obstbäume; sie bildet im Winter und Frühjahr zahlreiche kleine, rot gefärbte Perithecien[371].
Offizinell ist Secale cornutum (Pharm. germ., austr., helv.), Mutterkorn, das Sklerotium von Claviceps purpurea.
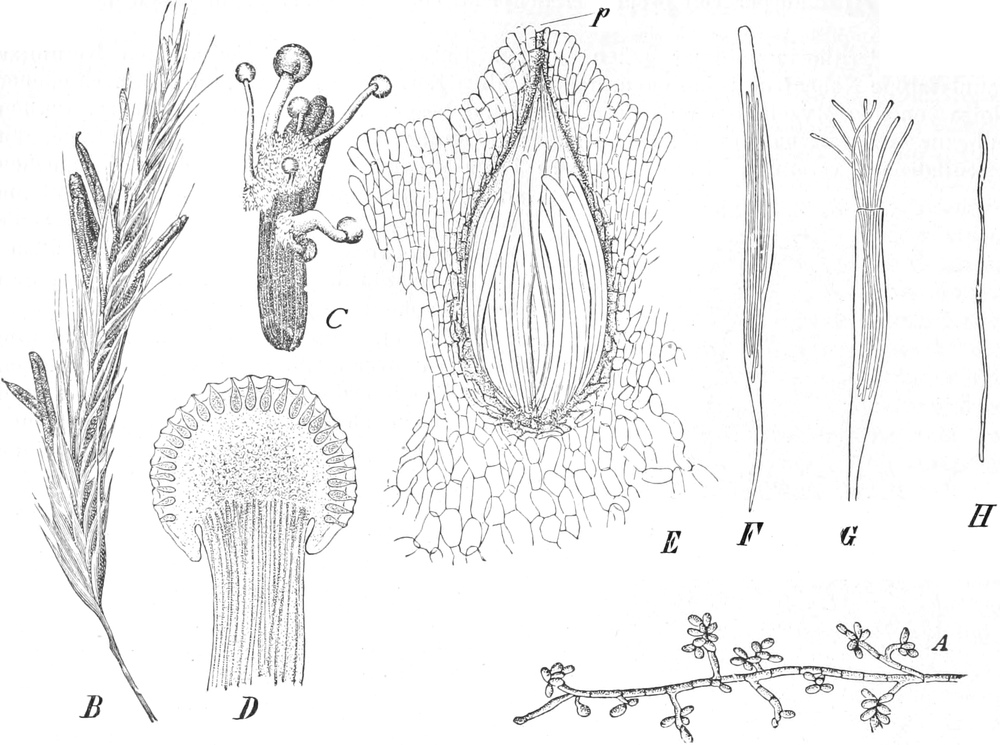
Fig. 388. Claviceps purpurea. A Konidienbildender Myzelfaden. B Roggenähre mit mehreren reifen Sklerotien. C Gekeimtes Sklerotium mit gestielten, zusammengesetzten Fruchtkörpern. D Längsschnitt durch einen Fruchtkörper mit zahlreichen Perithecien. E Einzelnes Perithecium stärker vergrößert. F Geschlossener Askus mit acht fadenförmigen Sporen. G Austreten der Sporen. H Einzelne Spore. A nach BREFELD, C–H nach TULASNE, B phot. nach der Natur. — Offizinell und giftig.
4. Ordnung. Discomycetes, Scheibenpilze[372]. Die formenreichen Diskomyceten unterscheiden sich von den übrigen Ordnungen dadurch, daß ihre reifen Schlauchfrüchte das aus Sporenschläuchen und aus Saftfäden oder Paraphysen bestehende Hymenium offen an ihrer Oberseite tragen (Fig. 382, 390).
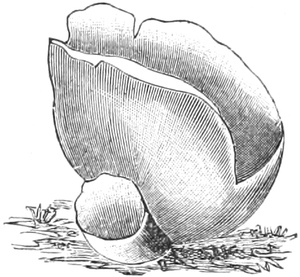
Fig. 389. Peziza aurantiaca. Nat. Größe. Nach KROMBHOLZ.
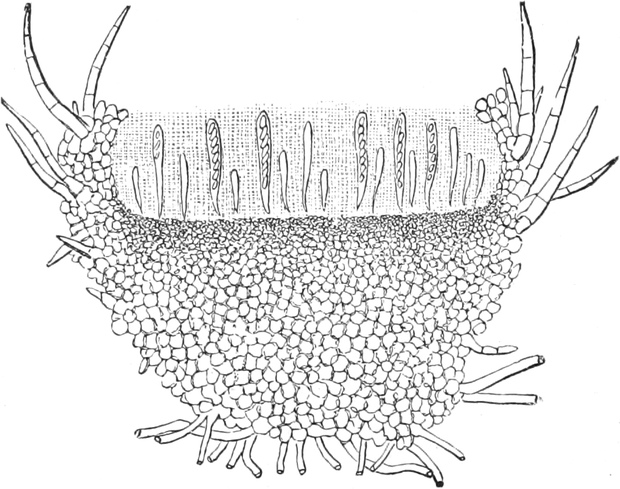
Fig. 390. Lachnea pulcherrima. Sporenreifes geöffnetes Apothecium. Zwischen den Paraphysen sind alte und junge Schläuche verteilt. Nach WORONIN. Aus V. TAVEL, Pilze.
Die überwiegende Mehrzahl der Diskomyceten, als deren Typus die Gattung Peziza gelten kann, vegetiert auf lebenden oder toten Pflanzenteilen, besonders auf altem Holz, zum Teil aber auch als Erdpilze in Humusboden. Sie besitzen napf- oder becherförmige, fleischige oder lederartige Askusfrüchte, meist von geringem Durchmesser. Eine der größten Formen ist die erdbewohnende Peziza aurantiaca (Fig. 389) mit bis 7 cm breiten, unregelmäßig becherförmigen Früchten, die lebhaft orangerot gefärbt sind, während die Mehrzahl der Arten graue oder braune Färbung aufweist. Solche Becherfrüchte bezeichnet man als Apothecien.
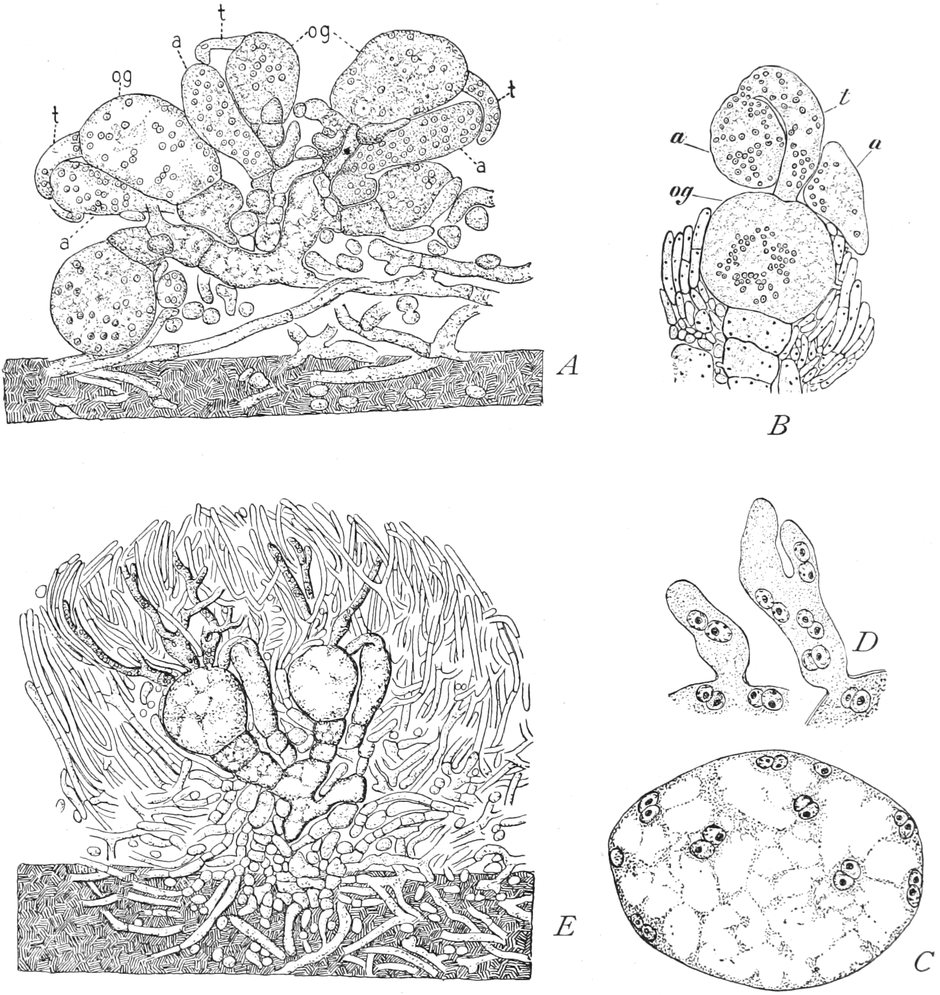
Fig. 391. Pyronema confluens. A Anlage eines Apotheciums, Oogonien og mit Trichogynen t, Antheridien a. Vergr. 450. B Fusion des Antheridiums mit der Trichogynspitze. Vergr. 300. C Querschnitt, Paarung der männlichen und weiblichen Kerne im Oogonium. Vergr. 1000. D Einwanderung der Paarkerne in die askogenen Schläuche des Oogoniums. Vergr. 1000. E Junges Apothecium. Die den Oogonien entspringenden askogenen Schläuche verzweigen sich und werden von sterilen Hyphen eingehüllt. Vergr. 450. B nach HARPER, A, C, D, E nach CLAUSSEN.
Die Apotheciumentwicklung sei an dem Beispiel des zuerst von R. HARPER eingehend untersuchten Pyronema confluens dargestellt, dessen etwa 1 mm breite, fleischige, gelbliche oder rötliche, gesellig beisammenstehende Fruchtkörper häufig auf Brandstellen in Wäldern gefunden werden. Das Myzelium erzeugt eine Rosette von mehreren größeren Karpogonen und kleineren Antheridien als Anlage eines Apotheciums (Fig. 391 A). Das Karpogon oder Askogon ist ein kugeliges, vielkerniges Oogonium, dessen Scheitel eine vielkernige, schnabelförmig gebogene Zelle, das Trichogyn, aufsitzt. Aus einem benachbarten Myzelfaden entspringt das keulenförmige, vielkernige Antheridium, dessen Spitze mit dem Trichogynscheitel mittels Durchbrechung der Wandung in offene Verbindung tritt. Die männlichen Kerne wandern zunächst in die Trichogynzelle ein (B), dann nach Durchbrechung der Basalwand des Trichogyns in das Oogonium, während die Trichogynkerne zugrunde gehen. Nun grenzt sich die Eizelle wieder ab und treibt zahlreiche askogene Schläuche, die die Kerne aus ihr aufnehmen, sich verzweigen und schließlich die Asci bilden (E), während die sterilen Hyphen und die Paraphysen zwischen den Schläuchen aus den Hyphenzellen unterhalb der Sexualorgane entspringen. Nach HARPER sollen die männlichen und weiblichen Kerne im Karpogon paarweise miteinander kopulieren; nach neuerer Untersuchung von CLAUSSEN aber legen sie sich nur dicht nebeneinander (C) und bleiben auch in den askogenen Fäden, in denen sie sich konjugiert weiter teilen, deutlich voneinander getrennt (D). Die Zellen der askogenen Fäden führen in der Nähe des Askogons bis zu acht Kernpaare, weiter oben aber nur ein Kernpaar. Erst in der zweikernigen Anlage des Askus findet die Kopulation der beiden Kerne, also eines männlichen mit einem weiblichen Sexualkernabkömmling, zum Askuskern statt (Fig. 392).
Bei manchen Diskomyceten ist eine mit Geschlechtsverlust verbundene Rückbildung der Sexualorgane eingetreten. Entweder funktionieren die Antheridien nicht mehr oder sind ganz unterdrückt, und in extremen Fällen fehlen auch die Askogone, an deren Stelle nur Hyphenknäuel sich erkennen lassen. Stets aber lassen sich die askogenen Hyphen in den Fruchtkörperanlagen nachweisen.
Die Asci entstehen an den Enden der askogenen Hyphen in verschiedener Weise, entweder direkt aus den zweikernigen Endzellen, meist aber indem diese je einen seitlichen, rückwärts gerichteten, hakenförmigen Auswuchs bilden, worauf sich das Kernpaar konjugiert teilt (Fig. 392 A). Seine beiden unteren Tochterkerne liefern die Kerne für die Hakenzelle h und die Stielzelle s, die sich durch Querwände von der endständigen, die beiden oberen Tochterkerne aufnehmenden Askusanlage a abgrenzen (B). Hierauf verschmelzen die beiden Kerne des jungen Askus (C). Dieser wächst heran und bildet nach dreimaliger Teilung seines Kernes die acht Askosporen (D). Die Hakenzelle tritt in offene Verbindung mit der Stielzelle s, so daß eine zweikernige Fusionszelle entsteht, die nun ebenfalls zu einer neuen Askusanlage schreiten kann. So entstehen komplizierte askogene Hyphensysteme.
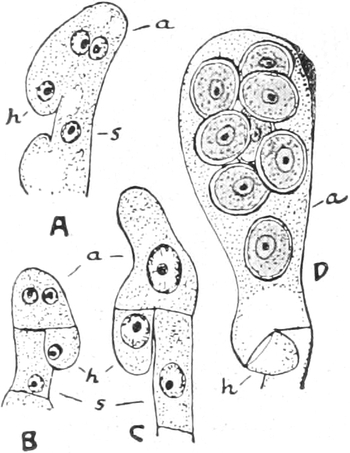
Fig. 392. Askus-Entwicklung. A–C Pyronema confluens. Nach HARPER. D Junger Askus mit acht Sporen von Boudiera. Nach CLAUSSEN. Erklärung im Text.
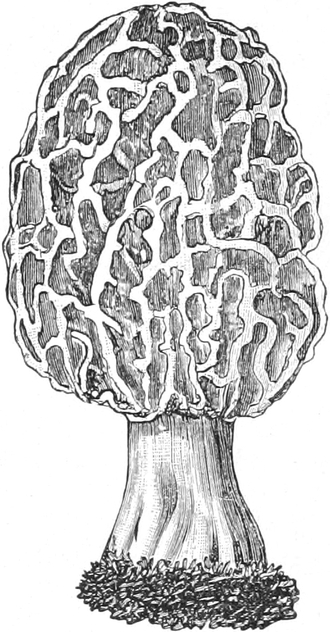
Fig. 393. Morchella esculenta. 4⁄5 nat. Gr.
Die eigenartigste Ausbildung erfährt der Fruchtkörper der Diskomyceten in der Gruppe der Helvellaceen oder Morchelpilze, die mit ihrem Myzel im Humusboden vegetieren. Bei der Gattung Morchella, Morchel (Fig. 393), besteht der große Fruchtkörper aus einem aufrechten dicken Stiel, auf dem ein kegelförmiger oder abgerundeter Hut mit grubiger Oberfläche sich erhebt. Sexualität ist bei den Morcheln noch nicht nachgewiesen. Das Hymenium (Fig. 382) mit seinen achtsporigen Ascis überzieht die Oberfläche des Hutes. Die Morcheln sind vorzügliche Speisepilze[373], besonders M. esculenta, die Speisemorchel, mit blaßgelbbraunem, eiförmigem Hut, bis 12 cm hoch, M. conica, die Spitzmorchel, mit dunkelbraunem, kegelförmigem Hut, bis 20 cm hoch, u. a. Verwandt sind die ähnlich gestalteten Lorcheln, deren Hut aber mützenförmig herabgeschlagen, unregelmäßig gelappt und blasig aufgetrieben ist, so Gyromitra esculenta, mit schwarzbraunem Hut und weißlichem Stiel. Die Lorcheln sind eßbar, enthalten aber in frischem Zustand die Helvellasäure, die unter Umständen giftig wirken kann; starke Erhitzung beim Braten der Pilze oder längeres Abbrühen ist anzuraten[374].
5. Ordnung. Tuberineae, Trüffelpilze[375]. Die Trüffelpilze sind saprophytische, im Humus der Wälder unterirdisch (hypogäisch) lebende Askomyceten, die zu den Mykorrhizen bildenden Pilzen gehören. Die Askusfrüchte, unter der Bezeichnung Trüffeln bekannt, stellen knollenförmige Körper vor. Sie sind von einer dicken Hülle umgeben und von nach außen mündenden Gängen durchzogen, deren Wandungen von Hymenien aus keulenförmigen Ascis bedeckt sind (Fig. 394). Die Sporen werden zu wenigen in den Ascis erzeugt, bei den echten Trüffeln (Tuber) meist zu vier und meist mit stacheligem oder netzförmig verdicktem Epispor versehen. Sie gelangen durch Zerfall der Asci und der Fruchtkörperwandung in den Boden.
Manche Tuberaceen liefern eßbare Fruchtkörper[373] von aromatischem Geschmack. Sie werden mit Hilfe dressierter Hunde oder Schweine besonders in Frankreich und Italien gesammelt. Die wichtigsten sind die schwarzen Trüffeln, Tuber brumale, melanosporum (Perigord-Trüffel), aestivum und mesentericum, die außen schwarzbraun gefärbt und mit Warzen versehen sind, ferner die weiße Trüffel, Choiromyces maeandriformis, die außen blaßbraun, innen weiß gefärbt ist.
Die Fruchtkörper werden in frühester Jugend offen angelegt, wie bei den Diskomyceten, mit denen die Trüffeln verwandt sind.
6. Ordnung. Exoasceae[376]. Die wichtigste Gattung ist Taphrina (einschl. Exoascus), deren Arten als parasitische Pilze auf verschiedenen Bäumen leben und teils als einjährige Pilze sich nur in den Blättern entwickeln und fleckiges Erkranken derselben bewirken, teils mit ihrem Myzel im Gewebe der Nährpflanzen überwintern, somit jährlich wiederkehrende Krankheiten an diesen verursachen. Das Myzel veranlaßt dann häufig die befallenen Sprosse zu reichlichen anomalen Verzweigungen, die man als Hexenbesen bezeichnet. So erzeugt Taphrina Carpini Hexenbesen auf der Weißbuche, Taphrina Cerasi solche auf Kirschbäumen. Taphrina deformans bewirkt die Kräuselkrankheit der Pfirsichblätter. Taphrina Pruni dagegen schmarotzt in den jungen Fruchtknoten der Pflaumen, die sie zu hohlen Pilzgallen, sog. Taschen, umbildet; ihr Myzel überwintert in den Zweigen.
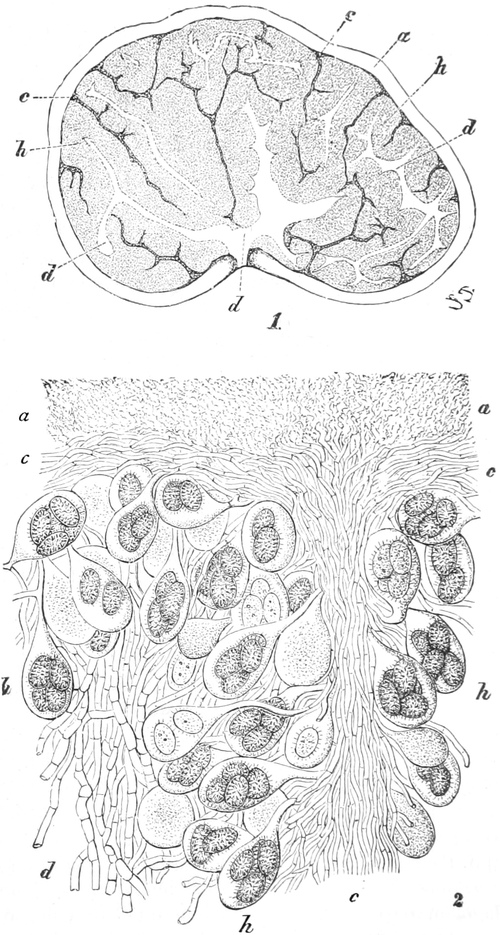
Fig. 394, Tuber rufum. 1 Ein Fruchtkörper im Vertikalschnitt. Vergr. 5. a Die Rinde, d lufthaltiges Gewebe, c dunkle Adern lückenlosen Gewebes, h das askusbildende Gewebe. 2 Ein Stückchen des Hymeniums. Vergr. 460. Nach TULASNE. Aus V. TAVEL, Pilze.
Die Askusbildung vollzieht sich, soweit bisher bekannt, in der Weise, daß das Myzelium zwischen die Epidermis und die Kutikula der Blätter oder der Fruchtknoten eindringt und sich hier reichlich verzweigt. Die einzelnen Hyphenzellen schwellen an und bilden meist unter Abgliederung einer basalen Stielzelle je einen die Kutikula nach außen durchbrechenden Askus, der wie bei den übrigen Schlauchpilzen anfangs zwei Kerne aufweist und nach Verschmelzung beider in drei Teilungsschritten acht Sporen erzeugt (Fig. 395). Die zahlreichen Asci stehen dicht nebeneinander.
Die Sporen sprossen in Wasser oder zuckerhaltiger Nährlösung, häufig sogar schon in den noch geschlossenen Schläuchen direkt zu Konidien aus, eine Form der Konidienvermehrung, die als Hefesprossung bezeichnet wird; so bei Taphrina Pruni.
Die Exoascaceae sind vielleicht als reduzierte Askomyceten aufzufassen, bei denen die Sexualorgane vollständig rückgebildet wurden.
7. Ordnung. Saccharomycetes, Hefepilze, Sproßpilze[377]. Die zur Gattung Saccharomyces vereinigten Bier-, Branntwein- und Weinhefen stellen sehr einfache, einzellige Pilze vor, die nur in Form von kugeligen, ovalen oder zylindrischen Zellen auftreten. Sie enthalten einen Kern und vermehren sich fortgesetzt durch Zellsprossung (Fig. 396). Myzelbildung fehlt, höchstens bleiben die Zellen in Ketten eine Zeitlang vereinigt. Nach Erschöpfung des Substrats, bei freiem Zutritt von Sauerstoff und bei günstiger Temperatur bilden die Hefen Asci, die äußerlich den Hefezellen gleichen, im Innern aber einige wenige Sporen erzeugen. Bei manchen Hefepilzen ist eine mit Kernverschmelzung verbundene Kopulation zweier Zellen beobachtet, so bei Saccharomyces Ludwigii, dessen vier Sporen im Askus keimen und dann paarweise durch je einen schnabelartigen Kopulationskanal fusionieren, worauf dieser zum Keimschlauch sich verlängert und mit der Abgliederung von Hefezellen beginnt, ferner bei der Ingwerbierhefe Zygosaccharomyces und bei Schizosaccharomyces, deren Hefezellen mittels langer Schläuche vor der Sporenbildung kopulieren. Diese Kernfusionen entsprechen vielleicht derjenigen im jungen Askus der übrigen Askomyceten.
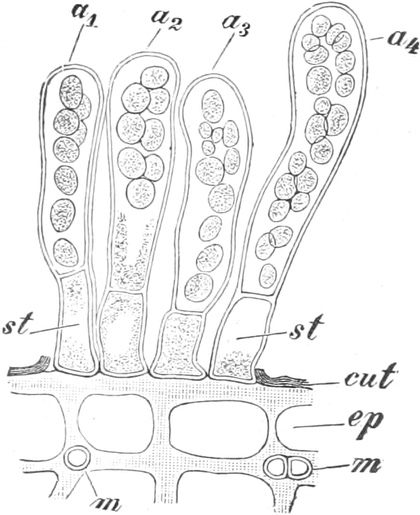
Fig. 395. Taphrina Pruni. Querschnitt durch die Epidermis einer infizierten Pflaume. Vier reife Asci. a1 a2, mit acht Sporen, a3, a4 mit Konidiensprossung aus den Sporen, st Stielzelle des Askus, m Myzel quer durchschnitten, cut Kutikula, ep Epidermis. Vergr. 600. Nach SADEBECK.
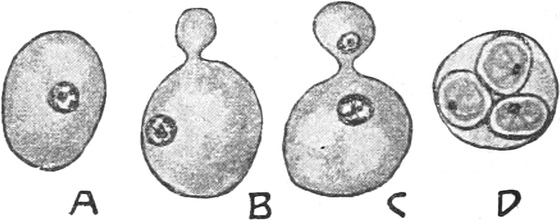
Fig. 396. Saccharomyces cerevisiae. A Hefezelle. B, C In Sprossung. D Askus mit Sporen (in Vierzahl gebildet). Vergr. 1125. Nach GUILLIERMOND.
Die Hefepilze sind in physiologischer Beziehung als Gärungserreger bemerkenswert; sie bewirken vermittels der von ihnen erzeugten Zymase die Spaltung von Trauben- und Fruchtzucker in Alkohol und Kohlensäure (vgl. S. 238). Die Bierhefe, Saccharomyces cerevisiae, ist nur in der kultivierten Form bekannt; der Weinhefenpilz, S. ellipsoideus, dagegen tritt in der Natur schon im Boden der Weinberge in Sporenform auf und gelangt von dort auf die Trauben und so in den Most. Beide Arten kommen in verschiedenen Rassen vor, die in Reinkulturen gezüchtet werden, um so in den Gärungsbetrieben Verwendung zu finden. Außer Saccharomyces gehören zu den Hefepilzen noch einige andere Gattungen, die zum Teil auch Myzelien bilden.
Die Hefen sind selbständige Pilze, wenigstens ist bis jetzt der Nachweis nicht geführt, daß sie in den Entwicklungsgang anderer Fadenpilze gehören, wenn auch bei verschiedenen Gattungen der Exoasceen und Ustilagineen ebensolche Hefesprossung zu beobachten ist. Ob sie reduzierte Askomyceten vorstellen oder zusammen mit einigen Gattungen sehr einfacher Schlauchpilze an den Beginn der Klasse gehören, bleibt noch unentschieden.
Infolge ihres Gehaltes an leichtverdaulichen Nährstoffen, besonders Eiweiß und Glykogen, auch etwas Fett, hat Hefe einen bedeutenden Nährwert und findet daher gereinigt und bei 125° C getrocknet als Nährhefe Verwendung. Aus Hefe läßt sich eine plastische hartgummiartige Masse, Ernolith, gewinnen, die zu technischen Zwecken (Druckstöcken) unter Heißpressung gebraucht wird.
8. Ordnung. Laboulbenieae[378]. Diese durch THAXTER genauer bekannt gewordenen eigenartigen Askomyceten sind winzige, auf Insekten, besonders Käfern, parasitisch lebende Pilze mit zwei- bis vielzelligem Thallus, der mittels eines spitzen Fortsatzes der untersten Zelle in der Chitinhaut befestigt ist oder auch mittels Rhizoiden in den Körper des befallenen Insektes eindringt. Als Beispiel sei der auf Stubenfliegen in Europa verbreitete Stigmatomyces Baerii genannt. Die zweizellige, mit Schleimhülle versehene Spore (Fig. 397 A) setzt sich mit der unteren Spitze fest (B); beide Zellen teilen sich sodann (C), und aus der oberen Zelle geht ein Anhängsel mit mehreren einzelligen, flaschenförmigen Antheridien (D, an) hervor, aus welchen die nackten, zilienlosen, kugeligen Spermatien entleert werden, während die untere Zelle zunächst in vier Zellen (D a, b, c, d) sich teilt, von denen a sich vorwölbt und einen vielzelligen weiblichen Apparat liefert. Die eigentliche Eizelle (Eac), Karpogon genannt, ist von einer Hülle umgeben und über ihr stehen zwei Zellen (Etp, t), von denen die oberste als Trichogyn frei hervorragt und als Empfängnisorgan für die Spermatien fungiert. Das Karpogon teilt sich nach der Befruchtung in drei Zellen, von denen die obere verschwindet, die untere (F, st) steril bleibt, die mittlere aber zu den Sporenschläuchen auswächst, die je vier zweizellige spindelförmige Sporen erzeugen (G). Die Sexualkerne treten im Karpogon nur paarweise dicht zusammen und teilen sich dann konjugiert weiter; erst in den Askusanlagen vollzieht sich die Kopulation der Kerne. Bei gewissen Arten fehlen die Antheridien; nach FAULL erhält das Karpogon in diesen Fällen einen zweiten Kern aus der Tragzelle des Trichogyns.
Actinomycetes, Strahlenpilze[379].
Die Stellung der Strahlenpilze im System ist zur Zeit noch durchaus unsicher. Im vegetativen Zustand bestehen sie aus sehr feinen monopodial verzweigten Fäden (Hyphen) von Bakteriendicke (0,5–0,8 μ). Der Fadeninhalt erscheint homogen, doch zerfallen die Fäden leicht in Bruchstücke und könnten daher doch wohl in Zellen gegliedert sein. Stärker färbbare Körnchen im Plasma sind vielleicht Zellkerne. Chlorophyll fehlt. Rundliche oder zylindrische Sporen entstehen reihenweise durch Teilung und Zerfall der Hyphenenden in kurze Zellen. Da weder Sexualorgane noch die für Algenpilze oder für Fadenpilze besonders charakteristischen Sporenbildungen bei den Strahlenpilzen nachgewiesen sind, fragt es sich, ob sie primitive Organismen oder ob sie als reduzierte Fadenpilze etwa den Ascomyceten anzuschließen sind. Von den Bakterien unterscheiden sie sich durch die Verzweigung der Hyphen und andere Sporenbildung, andererseits stimmen sie vielfach mit ihnen in Vorkommen und Lebensweise überein. In zahlreichen Rassen sind sie überall im Erdboden, an Pflanzen und Tieren, auf allen möglichen Substraten verbreitet, meist als Saprophyten, einige auch als Parasiten. So ist Actinomyces scabies der Erreger der Schorfkrankheit der Kartoffeln und Rüben. Eiterige Geschwüre beim Rind erzeugt A. bovis, ähnliche Krankheiten, besonders Eiterungen im Kiefer, beim Menschen A. hominis. Übrigens ist die Unterscheidung bestimmter Arten bei dem jetzigen Stand unserer Kenntnisse und bei der großen Variabilität der Rassen in Kulturen noch nicht durchführbar.
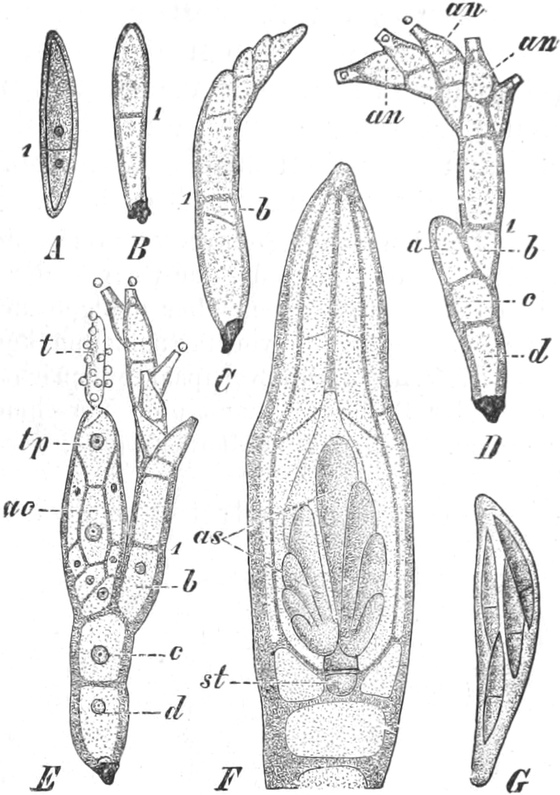
Fig. 397. Stigmatomyces Baerii. Erklärung im Text. A Spore, B, F Aufeinanderfolgende Stadien. D Mit Antheridien an, aus denen Spermatien austreten. E Oben mit Antheridien, links mit ausgebildetem weiblichem Apparat. F Perithecium mit sich entwickelnden Sporenschläuchen. G Reifer Sporenschlauch. Nach THAXTER.
Die Basidienpilze scheinen keine Sexualorgane mehr zu besitzen; nur bei den Uredineen oder Rostpilzen treten noch Gebilde auf, die man als überkommene, aber funktionslos gewordene männliche Organe deuten kann, und sogar auch noch Zellen, die den Karpogonen der Askomyceten zu entsprechen scheinen. An Stelle der Asci treten die ihnen gleichwertigen Basidien, die aber durch Zellsprossung die Basidiosporen, bei den meisten Vertretern in der Zahl vier, erzeugen. Ihre Anlagen zeigen insofern Übereinstimmung mit denen der Asci, als in sie ebenfalls zwei Zellkerne eintreten, die miteinander verschmelzen. Auf diese Kernverschmelzung (Karyogamie) scheint allgemein eine Reduktionsteilung zu folgen. In zwei Teilungsschritten entstehen so die vier Sporenkerne, die in die Aussprossungen der Basidie hineinwandern (Fig. 398).
Der bei den Askomyceten vorhandene Generationswechsel läßt sich bei den Basidiomyceten innerhalb der Gruppe der Uredineen noch in ähnlicher Form erkennen, bei den übrigen Gruppen aber mangels der Sexualorgane nicht mehr feststellen. Als Ersatz einer Kopulation von Sexualzellen kommen Zellfusionen in Betracht, die zweikernige Zellen liefern. Jedes Kernpaar entspricht zwar einem diploiden Kern, aber erst in der Anlage der Basidien kommt eine Verschmelzung der beiden haploiden Kerne eines Paares zu einem wirklich diploiden zustande, der dann bei seiner Teilung gleich wieder haploide Kerne liefert.
Die Basidien treten in drei verschiedenen Formen auf. Bei den Ordnungen der Uredineen und Auricularieen ist ihr oberer Teil durch Querwände in vier Zellen geteilt, von denen eine jede an ihrem oberen Ende eine auf einem dünnen Stielchen (Sterigma) sitzende Spore erzeugt (Fig. 404, 409). Bei den Tremellineen dagegen teilt sich die Basidie durch zwei Längswände in vier mit langen schlauchförmigen Sterigmen versehene Zellen (Fig. 399). Bei den Exobasidiinen, Hymenomyceten und Gasteromyceten ist der Basidienträger einzellig, ungeteilt; er bildet an seinem Gipfel vier Sporen, die meist auf Sterigmen sitzen, seltener ungestielt sind (Fig. 398, 421 2). Von Interesse ist das Verhalten der Ustilagineen, indem bei der einen Familie dieser Pilze quergeteilte Basidien, bei der anderen dagegen ungeteilte Basidien auftreten. Die Zahl der gebildeten Sporen ist hier nicht scharf begrenzt, sondern oft sehr groß.
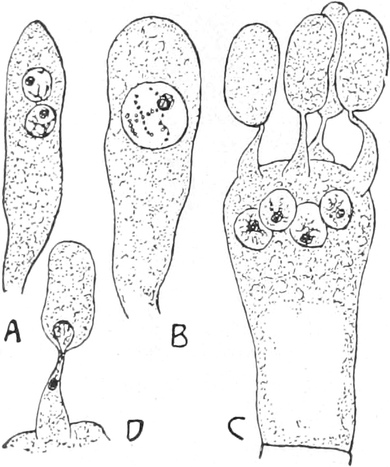
Fig. 398. Armillaria mellea. A Junge Basidie mit den beiden primären Kernen. B Nach Verschmelzung der beiden Kerne. — Hypholoma appendiculatum. C Basidie vor dem Übertritt der aus dem sekundären Basidienkern entstandenen vier Kerne in die jungen scheitelständigen Basidiosporen. D Übertritt des Zellkernes durch das Sterigma in die Basidiospore. Nach RUHLAND.
Fig. 399. Basidie einer Tremellinee (Tremella lutescens). Vergr. 450. Nach BREFELD. Aus V. TAVEL, Pilze.
Außer den Basidien treten wie bei den Askomyceten auch hier Konidien als Nebenfruktifikationen in dem Entwicklungsgang mancher Arten auf. Von der Konidienbildung verschieden ist die Entstehung ungeschlechtlicher Sporen durch Abrundung, Membranverdickung und schließliche Abtrennung der Hyphenzellen (Chlamydosporen nach BREFELD). So entstehen reihenweise die Brandsporen der Ustilagineen, endständig die Rostsporen der Uredineen. Bei ersteren gehen die Basidien unmittelbar aus den keimenden Brandsporen hervor (Fig. 401), bei letzteren aus bestimmten Rostsporen (Fig. 404 2). Beide Gruppen unterscheiden sich dadurch scharf von den übrigen Basidiomyceten, bei denen, abgesehen von einigen einfacheren Formen, von den Myzelien durch Hyphenverflechtung Fruchtkörper angelegt werden, an deren Oberfläche oder in deren Innerem dann die Basidien, meist in besonderen Schichten oder Hymenien zur Bildung gelangen. Diese Fruchtkörper entsprechen denen der Askomyceten, nur fehlen in ihren Anlagen die Sexualorgane. Die den Rost- und Brandsporen entsprechenden Basidienanlagen gehen hier aus Hyphenzellen der Fruchtkörper hervor, ohne daß Chlamydosporenbildung eintritt.
1. Ordnung. Ustilagineae, Brandpilze[381]. Die Brandpilze leben parasitisch in höheren Pflanzen. Besonders dienen die Gramineen als Nährpflanzen. Gewisse Arten sind dem Getreide in hohem Maße schädlich: sie erzeugen in den Fruchtständen von Hafer, Gerste, Weizen, Hirse, Mais die als Getreidebrand bekannten Krankheiten.
Das Myzelium bildet die Brandsporen, indem seine Hyphen sich durch Querwände in kurze Zellen teilen, die anschwellen, sich abrunden, ihre Membran aufquellen lassen und sich als Sporen innerhalb der später verschwindenden Gallerthüllen mit einer neuen Membran umgeben. So zerfällt das Myzelium in eine dunkelbraune oder schwarze Masse von Brandsporen. Diese sind Dauersporen, werden von den Wirtspflanzen aus durch den Wind zerstreut und keimen nach der Winterruhe zu den Basidien aus, deren Bildung bei den beiden Familien der Brandpilze, den Ustilaginaceen und den Tilletiaceen, nach verschiedenen Typen erfolgt.
Fig. 400. Ustilago. A In Nährlösung keimende Brandspore cl mit der Basidie (Promyzel) t, den Basidiosporen (Sporidien) c. Vergr. 450. B In Nährlösung sprossende Konidien. Vergr. 200. C Sproßverband von Konidien. Vergr. 350. Nach BREFELD. Aus V. TAVEL, Pilze.
Fig. 401. Ustilago scabiosae. A Aus der Brandspore gekeimte junge Basidie mit vier Kernen. B Sporenbildung an der vierzelligen Basidie. Nach HARPER.
Als wichtigster Vertreter der Ustilaginaceen ist die Gattung Ustilago zu erwähnen. Ust. Avenae, Hordei, Tritici, die früher als U. Carbo zusammengefaßt wurden, verursachen den Staubbrand in den Fruchtknoten von Hafer, Gerste, Weizen, Ust. Maydis an den Halmen, Blättern und Infloreszenzen des Mais die Bildung von großen, mit schwarzem Brandsporenpulver erfüllten, geschwürartigen Beulen und Blasen. Ust. violacea lebt in Caryophyllaceen (Lychnis, Saponaria), deren Staubbeutel von ihr an Stelle des Pollens mit Brandsporen erfüllt werden. An weiblichen Lichtnelkenpflanzen bewirkt der Pilz in den Blüten die Entwicklung von Staubgefäßen mit brandigen Antheren.
Die Brandsporen von Ustilago keimen nach der Ruhezeit auf dem Boden zu einem kurzen Schlauch (Promyzel), der sich durch drei bis vier Querwände teilt (Fig. 401) und die Basidie vorstellt; diese bringt seitlich am oberen Ende ihrer einzelnen Zellen sowie an ihrer Spitze die eiförmigen, hier einkernigen Basidiosporen (Sporidien) hervor. Wenn reichlich Nährstoffe dem Pilz zur Verfügung stehen, wie bei Kultur in Nährlösungen, werden beständig neue Sporen in großer Zahl abgegliedert (Fig. 400), und diese vermehren sich dann, indem sie fortgesetzt in Konidien weitersprossen. Sind keine reichlichen Nährstoffe im Substrat vorhanden, so erfolgen bei manchen Brandpilzen paarweise Fusionen zwischen den Konidien oder zwischen den Zellen des Promyzels (Fig. 403). Auf den Getreideäckern findet die Konidienbildung im feuchten gedüngten Boden statt, also bei saprophytischer Ernährungsweise, und die aus Konidien oder Fusionszellen schließlich hervorgehenden Fäden gehen zur parasitischen Lebensweise über, indem sie in Getreidekeimlinge eindringen und diese bis zur Vegetationsspitze durchwachsen, wo später die Infloreszenzen angelegt werden. In letzteren entwickelt sich das Myzel weiter und schließt mit der Erzeugung der Brandsporen ab.
Außer der Infektion junger Pflanzen kommt auch eine Infektion der Blüten vor, indem Brandsporen oder am Boden gebildete Konidien auf die Narben gelangen und dort zu Myzelien auskeimen, die in die Samenanlagen eindringen und schließlich im Keimling überwintern. Entweder findet ausschließlich Blüteninfektion statt, so bei Ustilago Tritici, Hordei, oder vorwiegend Infektion der Keimpflanzen, so bei U. Avenae, Sorghi, Panici miliacei, Crameri, während der Maisbrand mit seinen Konidien alle Teile noch junger Maispflanzen infizieren kann und sich auf die infizierte Stelle beschränkt.
Die Tilletiaceen führen ähnliche Lebensweise wie die Ustilaginaceen. Am bekanntesten sind Tilletia Tritici (auch T. Caries genannt) und Till. laevis, die Pilze des Stein- oder Stinkbrandes des Weizens. Die Weizenkörner werden vom Pilz mit schwärzlichen, nach Heringslake riechenden Brandsporen erfüllt, die bei ersterer Art netzförmig verdickte, bei letzterer glatte Wandung besitzen. Im Gegensatz zu den Ustilaginaceen erzeugt der Keimschlauch nach vorausgegangener mehrmaliger Teilung seines Kernes die hier fadenförmigen Basidiosporen nur an seinem Scheitel, in wirteliger Anordnung zu 8 bis 16 (Fig. 402 A). Sie zeigen die Eigentümlichkeit, daß sie paarweise miteinander in Verbindung treten (B) und somit auch paarweise abfallen. Die Sporenpaare keimen leicht aus und erzeugen an ihren Keimschläuchen wiederum je eine Konidie, aber von sichelförmiger Gestalt (Fig. 402 C). Bei reichlicher saprophytischer Ernährung wachsen die Keimschläuche zu größeren Myzelien heran, an denen in reichem Maße solche sichelförmigen Konidien an der Luft abgegliedert werden (D). Tilletia weist somit im Gegensatz zu Ustilago zweierlei Formen von Konidien auf. Im übrigen stimmt die Entwicklung bei beiden Gruppen überein.
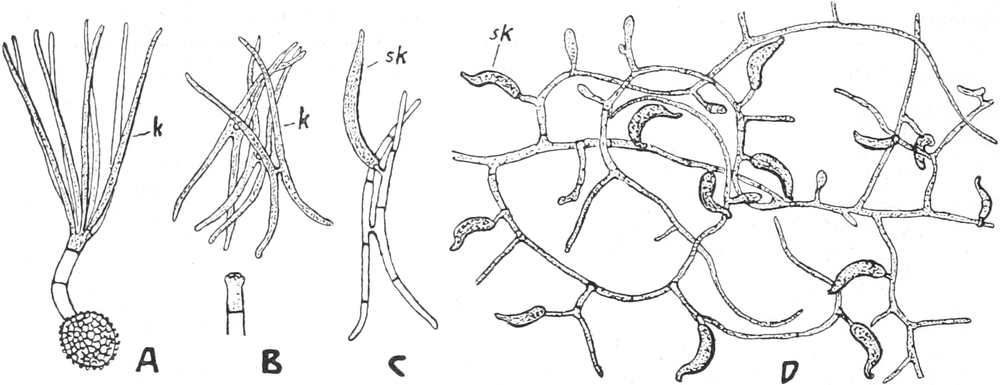
Fig. 402. Tilletia Tritici. A Die aus der Brandspore hervorgegangene Basidie mit vier Paaren endständiger Sporen k. Vergr. 300. B Ablösung der fusionierten Sporenpaare. Vergr. 250. C Ein solches in Keimung mit sichelförmiger Sekundärkonidie sk. Vergr. 400. D Myzelium mit sichelförmigen Konidien. Vergr. 350. Nach BREFELD.
Bezüglich des Verhaltens der Kerne der Brandpilze ist zu bemerken, daß allgemein in die jungen Brandsporen zwei Kerne eintreten, die dann verschmelzen. Bei der Keimung der Brandsporen ist eine Reduktionsteilung zu erwarten. Die Zellen des Promyzels und die Sporidien sind einkernig und bezeichnen den Beginn der haploiden Phase. Die Zweikernigkeit der Zellen wird nun auf verschiedene Weise erreicht. Bei U. Maydis, Doassansia Sagittariae besteht das parasitische Myzel aus einkernigen Zellen, und erst kurz vor der Sporenbildung fusionieren benachbarte Hyphenzellen durch Lösung der Querwand paarweise miteinander, wodurch zweikernige, die Sporen liefernde Zellen entstehen. Dagegen erhält bei U. carbo und wohl den meisten Brandpilzen das parasitische Myzel zweikernige Zellen dadurch, daß die Sporidien oder die aus ihnen hervorgehenden Konidien oder sogar schon die Promyzelzellen oder auch die Zellen der aus ihnen oft entstehenden verzweigten Myzelien paarweise fusionieren (Fig. 403). Ähnlich verhält sich auch Tilletia, bei der die Sporidien bereits vor ihrer Loslösung paarweise in Verbindung treten; aus der einen Sporidie tritt der Kern in die andere über. Die bei der Keimung aus ihr hervorgehenden Hyphenzellen und sekundären Sporidien, ebenso die Zellen des parasitischen Myzeliums sind demgemäß sämtlich zweikernig.
Für Ustilago violacea hat KNIEP nachgewiesen, daß die aus Sporidien hervorgehenden Konidien nicht miteinander kopulieren, wenn sie Abkömmlinge nur eines Sporidiums sind. Physiologische Geschlechtsdifferenzierung führt hier zur Bildung zweier zwar äußerlich gleicher, innerlich aber heterogener Sorten von Sporidien. Solche Geschlechtsdifferenzierung bei Ustilagineen dürfte sich nach KNIEP und RAWITSCHER bereits bei der Reduktionsteilung den Brandsporenkerns in die zwei ersten Promyzelkerne vollziehen, von denen einer und seine Abkömmlinge das eine Geschlecht (+), der andere das andere Geschlecht (–) erhält.
Bei den Brandpilzen sind somit haploide und diploide Phasen nicht übereinstimmend festgelegt.
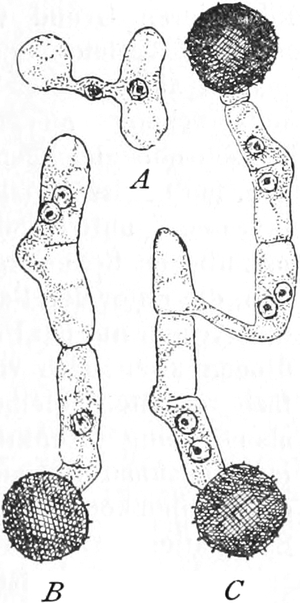
Fig. 403. Ustilago Carbo. A Kopulierende Sporidien. B Die zwei obersten Zellen eines Promyzels zu einer zweikernigen Zelle kopuliert. C Kopulation zwischen zwei Promyzelien. Vergr. 1000. Nach RAWITSCHER.
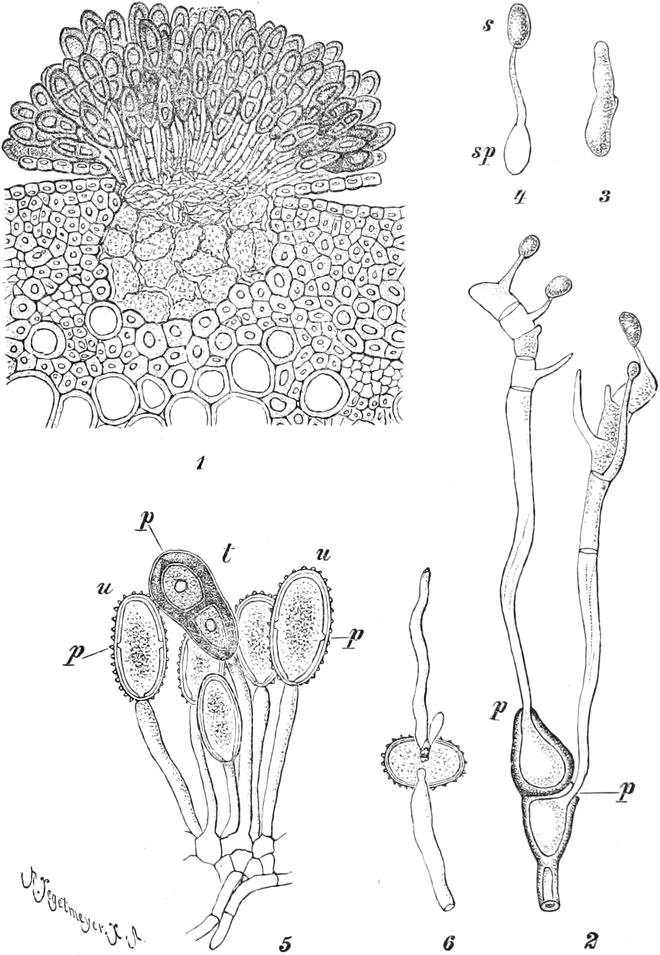
Fig. 404. Puccinia graminis. 1 Querschnitt durch einen Getreidehalm mit einem Teleutosporenlager. 2 Keimende Teleutospore mit zwei Basidien. 3 Vegetativ, 4 fruktifikativ keimende Basidiospore. Letztere mit Sekundärspore, welche gebildet wird, wenn zur Infektion einer Pflanze keine Gelegenheit geboten ist. 5 Gruppe von Uredosporen u, untermischt mit einer Teleutospore t, p die Keimsporen. 6 Keimende Uredospore. 1 Vergr. 150. 2 Vergr. ca. 230. 3, 4 Vergr. 370. 5 Vergr. 300. 6 Vergr. 390. 2, 3, 4 nach TULASNE. 5, 6 nach DE BARY. Aus V. TAVEL, Pilze.
2. Ordnung. Uredineae, Rostpilze[382]–[386]. Die Rostpilze leben als Parasiten mit ihren Myzelien in den Interzellularräumen hauptsächlich der Blätter höherer Pflanzen und sind die Erreger der sehr verbreiteten Rostkrankheiten. Von den Brandpilzen unterscheiden sie sich durch viel mannigfaltigere Sporenbildungen.
Auch hier entstehen Basidien nicht direkt am Myzel, sondern bei der Keimung besonderer Sporen, der Teleuto- oder Wintersporen, die für fast sämtliche Rostpilze charakteristisch sind. Diese Sporen werden in kleinen Gruppen unter der Epidermis der Nährpflanze aus den Endzellen dicht nebeneinander stehender Hyphenäste gebildet, entweder einzeln oder häufig zu zwei oder mehr in kurzer Kette; sie sind dickwandige, den Winter überdauernde Ruhesporen (Fig. 404, 1 und 5 t). Die Sporenlager durchbrechen gewöhnlich die Epidermis. Die Sporen besitzen anfangs, wie auch alle Zellen des sie bildenden Myzels, zwei Kerne; in reifem Zustande aber sind letztere zu einem Kern verschmolzen.
Bei der Keimung wächst aus der Teleutosporenzelle eine Basidie (Promyzel) hervor, die sich, wohl allgemein unter Reduktionsteilung ihres Kernes, in vier Zellen quer teilt und aus jeder Zelle auf einem Sterigma eine Basidiospore (Sporidie) erzeugt, die nur einen Zellkern enthält (Fig. 404, 2). Die Sporen werden durch den Wind verbreitet und keimen im Frühjahr auf den Blättern von Nährpflanzen derselben Art oder einer anderen Art zu einem interzellulären Myzelium, dessen Zellen sämtlich einkernig bleiben. Aus diesem Myzelium entwickeln sich nun zweierlei Gebilde, und zwar Spermogonien an der Blattoberseite, Äcidien an der Blattunterseite.
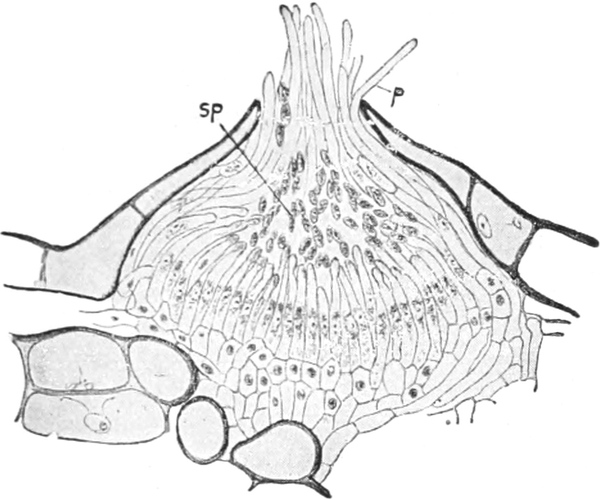
Fig. 405. Gymnosporangium clavariaeforme. Spermogonium auf Crataegusblättern, die Epidermis durchbrechend. sp Spermatien, p sterile Saftfäden oder Paraphysen. Nach BLACKMAN.
Die Spermogonien (Fig. 405) sind krugförmige Gebilde, deren Grund von Hyphenenden ausgekleidet wird, welche die mit je einem Zellkern ausgestatteten Spermatien abgliedern. Sie entsprechen morphologisch den gleichnamigen, bei gewissen Askomyceten auftretenden männlichen Sexualorganen, die unter den Basidiomyceten nur bei Uredineen zwar noch vielfach erhalten bleiben, aber keine Funktion mehr ausüben und auch ganz fehlen können. Die Spermatien vermögen in Nährlösungen kurze Keimschläuche zu treiben, sind aber nicht imstande, auf Blättern neue Infektionen hervorzurufen.
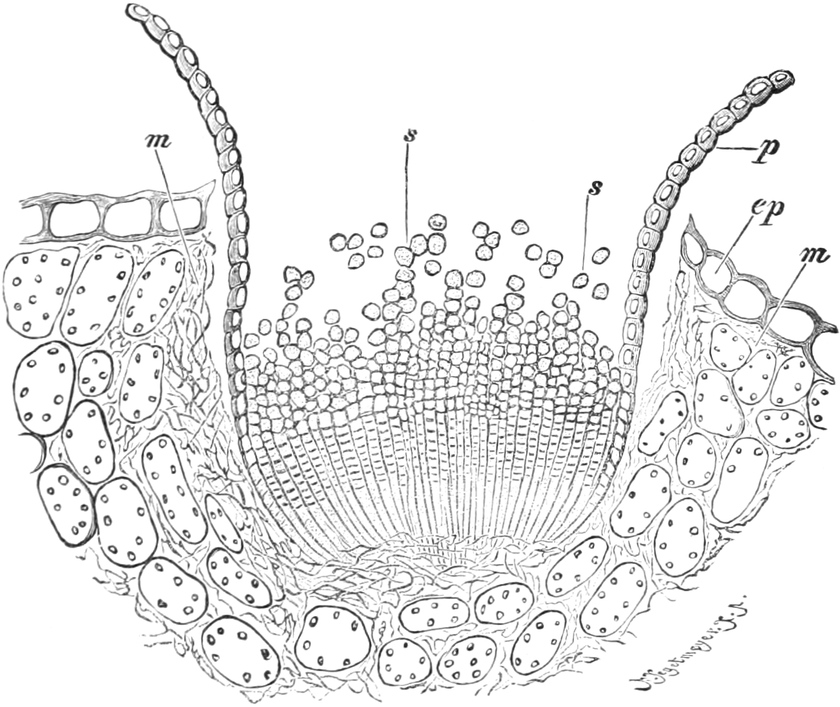
Fig. 406. Puccinia graminis. Äcidium auf Berberis vulgaris. ep Epidermis der Blattunterseite, m interzellulares Myzel, p Peridie, s Sporenketten. Vergr. 142.
Die Äcidien (Fig. 406) sind anfangs geschlossene, später sich öffnende, becherförmige Fruchtkörper, die zahlreiche, dicht nebeneinander stehende, von basalen Trägern abgegliederte Sporenketten enthalten. Meist umgibt eine einschichtige, aus dickwandigen Zellen bestehende Hülle (Peridie) das Äcidium. Die von BLACKMAN[382] an dem auf Brombeerblättern vorkommenden Rost, Phragmidium violaceum, untersuchte Entstehung eines solchen Organs erfolgt in der Weise, daß die unter der Blattoberhaut gelegenen Hyphenenden zunächst eine sterile, bald vergängliche Zelle an ihrer Spitze abgrenzen, und daß die darunter gelegene fertile Zelle anschwillt (Fig. 407 A). Sie enthält nur einen Kern; aber sie wird zweikernig dadurch, daß der Zellkern einer anstoßenden Myzelzelle in sie hinüberwandert, ohne daß Kernverschmelzung eintritt (konjugierte Kerne). Diese zweikernige „basale“ Zelle teilt sich nun in eine Kette von zweikernigen Sporenmutterzellen, die nochmals je in eine obere zweikernige Äcidiospore und eine untere, ebenfalls zweikernige, aber steril bleibende, bald zusammenschrumpfende Zwischenzelle zerlegt werden (B, C).
Nach CHRISTMAN[383] vollziehen sich diese Vorgänge in etwas anderer Weise bei dem auf Rosen schmarotzenden Phragmidium speciosum (Fig. 408) und ebenso nach neueren Untersuchungen auch bei Puccinia und anderen Gattungen. Die Äcidiumentwicklung dieser Formen darf als die typische gelten. Zwar teilen sich auch hier die Hyphenenden (A) in eine obere, sterile, vergängliche Zelle und in eine untere fertile Zelle (B); die fertilen Zellen verschmelzen aber paarweise miteinander (C), indem ihre Wandung im oberen Teile aufgelöst wird. Die beiden Kerne teilen sich darauf gleichzeitig und nebeneinanderliegend (konjugierte Teilung) in je zwei Tochterkerne, von denen zwei in den unteren Teil, zwei in den oberen Teil der Zelle rücken (D). Dieser grenzt sich nunmehr als erste Sporenmutterzelle durch eine Querwand ab. Die Bildung der Äcidiosporenketten erfolgt im übrigen wie zuvor dargestellt. Eine Peridie wird bei Phragmidium nicht angelegt, wohl aber bei Puccinia u. a.; sie geht hervor aus den steril bleibenden peripherischen Sporenketten und den die Decke des Peridiums bildenden Endzellen der mittleren Sporenreihen.
Fig. 407. Phragmidium violaceum. A Teil einer Äcidiumanlage, st sterile Zelle, a fertile Zellen, bei a2 Übertreten des Kernes einer benachbarten Zelle. B Bildung der ersten Sporenmutterzelle sm1 aus der Anlage a einer Sporenkette. C Weitere Teilung, aus sm1 die Äcidiospore ae und die Zwischenzelle z gebildet, sm2 die zweite Sporenmutterzelle. D Reife Äcidiospore. Nach BLACKMAN.
Fig. 408. Phragmidium speciosum. A Erste Anlage eines Äcidiums unter der Blattepidermis von Rosa. B Teilung einer Hyphenendzelle in die obere sterile vergängliche und die untere fertile Zelle. C Kopulation zweier benachbarter fertiler Zellen. D Weiteres Stadium, erste Kernteilung vollendet. E Abgliederung der ersten Äcidiosporenmutterzelle. F Kette von Äcidiosporen a1 a2, Zwischenzellen z1 z2, die zuletzt gebildete Mutterzelle sm noch nicht geteilt. Nach CHRISTMAN.
Die reifen zweikernigen Äcidiosporen (Fig. 407 D) stäuben aus, infizieren eine neue Wirtspflanze, und aus jeder Spore geht wieder ein interzellulares Myzelium hervor, das dann bald im Sommer zur Bildung von Uredo- oder Sommersporen übergeht. Diese entstehen in kleinen rundlichen oder strichförmigen Lagern, einzeln aus den anschwellenden Endzellen ihres Trägers (Fig. 404, 5 und 6) und enthalten, wie auch die Zellen des ganzen, aus der Äcidiospore hervorgehenden Myzels, zwei Kerne. Sie besorgen im allgemeinen die Ausbreitung des Pilzes im Sommer. Später werden dann in denselben oder in anderen Lagern die Teleutosporen gebildet, in denen erst die Kopulation der beiden Kerne zu einem einzigen stattfindet, wie dies überhaupt in den Basidienanlagen zu geschehen pflegt.
Die beiden Formen der Zellfusionen in den Anlagen der Äcidien sind auch noch bei anderen Uredineen nachgewiesen und können nur als Ersatz ehemaliger Befruchtungsvorgänge angesehen werden. Wenn wir die Uredineen von den Askomyceten ableiten wollen, müssen wir die Spermatien als funktionslos gewordene männliche Sexualzellen ansehen und die sog. fertilen Zellen der Äcidienanlagen mit den Karpogonen vergleichen. Zieht man den Vergleich noch weiter, so würden in dem Entwicklungsgang der Uredineen diese fertilen Zellen den Anfang von diploiden ungeschlechtlichen Generationen vorstellen, die nach Bildung von Äcidio-, Uredo- und Teleutosporen in den den Ascis entsprechenden Basidien ihren Abschluß finden, während die haploide geschlechtliche Generation aus den Basidiosporen hervorgeht und in den Äcidiumanlagen endigt. Die Übereinstimmung zwischen Askomyceten und Uredineen zeigt sich auch in dem Verhalten der Sexualkerne, die in den Sexualorganen nur sich paaren, bei den Schlauchpilzen aber erst in den Askusanlagen, bei den Rostpilzen erst in den Basidienanlagen endgültig miteinander kopulieren.
Die drei Sporenformen der Uredineen zeigen nach CHRISTMAN in ihrer Entwicklung aus den sie bildenden „basalen“ Zellen gewisse Übereinstimmung, so daß sie als morphologisch gleichwertig angesehen werden können.
Der Entwicklungsgang der Rostpilze ist also höchst kompliziert. Entweder treten die verschiedenen Sporenformen im Laufe des Jahres an ein und derselben Nährpflanze auf; solche Uredineen bezeichnet man als autözische. Oder Spermogonien und Äcidien finden sich auf der einen Nährspezies, Uredo- und Teleutosporen dagegen auf einer anderen, der ersteren im System oft sehr ferne stehenden Pflanze. Bei diesen letzteren heterözischen Arten liegt also ein Wirtswechsel des Parasiten vor. Neben solchen sehr wählerischen gibt es aber auch pleophage heterözische Rostpilze, deren Äcidien oder deren Uredo-Teleutosporen auf zahlreichen verschiedenen Nährpflanzen auftreten[384].
Als Beispiel für Heterözie sei Puccinia graminis, der häufigste Getreiderostpilz, erwähnt, der seine Uredo- und Teleutosporen an Blättern und Halmen von Gräsern, besonders Roggen, Weizen und Gerste erzeugt. Die Äcidien und Spermogonien dieser Art entwickeln sich auf den Blättern der Berberitze (Berberis vulgaris). Im Frühjahr treiben zunächst die überwinterten Teleutosporen ihre Basidien, von denen die vier Basidiosporen sich ablösen (Fig. 404, 2), um auf die Berberitzenblätter durch den Wind verbreitet zu werden. Der Keimschlauch dringt ein und entwickelt sich zum Myzel, aus dem bald an der Blattoberseite die Spermogonien, auf der Unterseite die Äcidien (Becherrost, Fig. 406) entstehen. Die rotgelben Äcidiosporen stäuben aus der Peridie aus und gelangen auf Gräser. Das aus ihnen hervorgehende Myzel bringt im Sommer zunächst die Uredosporen (Fig. 404, 5) hervor. Die Uredosporen sind einzellig, mit vier äquatorialen Keimporen in der außen mit kleinen Warzen bedeckten Wandung versehen und enthalten rotgelbe Fettröpfchen in ihrem Plasma. Sie keimen auf Getreide und verbreiten rasch die Rostkrankheit. Gegen Ende des Sommers werden in denselben Lagern (Fig. 404, 1) die dunkelbraunen, stets zu zwei vereinigten, dickwandigen Teleutosporen mit je einem Keimporus erzeugt, von denen im nächsten Jahr die Entwicklung von neuem anhebt. Auch kann in dem durch Uredosporen infizierten Wintergetreide der Pilz überwintern und mit Übergehung von Basidiosporen und Berberis-Äcidium im nächsten Sommer seine Uredo- und Teleutosporen bilden[385].
Nicht alle Uredineen weisen einen so reich gegliederten Entwicklungsgang auf. Rostpilze, die sämtliche Sporenarten erzeugen, heißen Eu-Formen, solche ohne Uredo: Opsis-Formen, solche ohne Äcidien: Brachy-Formen, solche ohne Äcidien und Uredo: Mikro-Formen. Bei denjenigen Rostpilzen, die keine Äcidien besitzen, finden wir in den aus den Basidiosporen hervorgehenden Myzelien einkernige Zellen, später aber, vor der Bildung der Teleutosporen, zweikernige Zellen. Die Zweikernigkeit der Zellen wird bei ihnen, wie bereits für einzelne Fälle festgestellt wurde, in den Anlagen der ersten Uredosporen oder, wenn solche fehlen, in den Anlagen der Teleutosporen (z. B. bei Puccinia Malvacearum) durch Kopulation zweier Zellen ähnlich wie in den oben geschilderten Äcidiumanlagen erreicht, ein Verhalten, das die Homologie der drei genannten Sporenformen bestätigt.
Abweichend von allen übrigen Rostpilzen und einfacher verhält sich Endophyllum[386], dessen Arten auf Sempervivum und auf Euphorbia schmarotzen und weder Uredo- noch Teleutosporen bilden. Das aus den Basidiosporen hervorgehende, aus einkernigen Zellen bestehende Myzel bildet Spermogonien und Äcidien; in den Anlagen der Äcidiosporenketten erfolgen Zellfusionen nach Art von Phragmidium, wodurch sie zweikernig werden. Die reifen Äcidiosporen verhalten sich nunmehr wie die Teleutosporen der übrigen Rostpilze; ihre beiden Kerne verschmelzen zu einem einzigen; dann keimen die Sporen aus zu Basidien mit vier einkernigen Basidiosporen und erfahren vorher eine Reduktionsteilung ihrer Kerne (Fig. 409). Vielleicht kann Endophyllum als eine primitive Form betrachtet werden. Ebenso verhält sich auch Caeoma nitens[387].
Fig. 409. Endophyllum Sempervivi. A Junge noch zweikernige Äcidiospore. B Reife einkernige Spore. C Keimende Spore, deren Kern sich bereits in zwei Kerne geteilt hat. D Äcidiospore zu einer jungen vierzelligen Basidie ausgekeimt. Nach HOFFMANN.
3. Ordnung. Auricularieae. Basidien wie bei den Uredineen quergeteilt, mit vier Sporen. Hierher nur wenige Formen, unter denen am bekanntesten der als Volksheilmittel noch vielfach verwendete Holunderschwamm oder das Judasohr, Auricularia sambucina ist, mit gallertartigen, dunkelbraunen, muschelförmigen Fruchtkörpern, die aus alten Holunderstämmen hervorbrechen und auf ihrer Innenseite das Basidienhymenium tragen.