ZWEITER TEIL Spezielle Botanik.
Reading edition
Die spezielle Botanik ist die spezielle Morphologie, Physiologie und Ökologie der Gewächse. Während der allgemeinen Botanik die Aufgabe zufiel, uns mit den Gesetzen bekannt zu machen, welche die Gestaltung, die Lebensvorgänge und die Anpassungen im ganzen Pflanzenreiche beherrschen, soll uns die spezielle Botanik in die Kenntnis der einzelnen Gruppen des Pflanzenreichs einführen. Auf Grund morphologischen Vergleichs der mannigfaltigen einzelnen Pflanzentypen miteinander versucht die spezielle Morphologie einen Einblick in die Phylogenie des Pflanzenreichs zu gewinnen. Die Lösung dieser Aufgabe würde uns den Schlüssel zur Aufstellung eines natürlichen Systems der Organismen liefern; denn als ein natürliches kann nur jenes gelten, das auf ihrer wirklichen Verwandtschaft fußt. Freilich wird jedes von uns aufgestellte „natürliche“ System nur ein sehr unvollkommenes sein, da wir den phylogenetischen Zusammenhang nicht direkt feststellen können, sondern ihn nur indirekt aus dem morphologischen Vergleich erschließen müssen.
Einem solchen natürlichen System der Organismen, das nach dem wirklichen Zusammenhang zwischen den Lebewesen sucht, stehen die künstlichen Systeme gegenüber, die von vornherein nur ein praktisches Ziel ins Auge fassen und die Wesen so gruppieren wollen, daß man den Namen eines jeden derselben möglichst leicht auffinden oder bestimmen könne. Von allen künstlichen Systemen früherer Zeiten hatte für solche Zwecke das von CARL LINNÉ im Jahre 1735 aufgestellte Sexualsystem die größte Bedeutung gewonnen.
LINNÉ verwertete ausschließlich Merkmale, die sich auf die Verhältnisse der Geschlechtsorgane beziehen, und unterschied danach in seinem Sexualsystem im ganzen 24 Klassen von Pflanzen. In der letzten, 24. Klasse vereinigte er alle Gewächse ohne deutlich sichtbare Geschlechtsorgane und nannte sie Kryptogamen; von diesen waren damals nur verhältnismäßig wenige Formen bekannt, und die mannigfaltigen Fortpflanzungsverhältnisse dieser großen Gewächsgruppe lagen noch in tiefem Dunkel. Den Kryptogamen stehen die übrigen 23 Klassen als Phanerogamen oder Pflanzen mit deutlich sichtbaren Geschlechtsorganen, „in Blüten“, gegenüber. Die Phanerogamenklassen unterschied LINNÉ zunächst nach der Verteilung der Geschlechter in den Blüten in solche mit Zwitterblüten (Klasse I-XX) und solche mit eingeschlechtigen oder mit teils eingeschlechtigen, teils zwitterigen Blüten (XXI-XXIII). Die zwitterblütigen teilte er weiter in drei Gruppen ein: Pflanzen mit freien Staubblättern (I-XV), solche mit verwachsenen Staubblättern (XVI-XIX) und solche, deren Staubblätter mit dem Fruchtknoten verwachsen sind (XX); die erste dieser drei Gruppen weiterhin nach der Zahl, der Insertion und den Längenverhältnissen der Staubblätter. Jede der 24 Klassen gliederte er in Ordnungen nach ähnlichen Gesichtspunkten. Manche der so von ihm erhaltenen Klassen und Ordnungen entsprechen natürlichen Verwandtschaftsgruppen, die indessen in seinem System bunt durcheinander gewürfelt sind; die meisten aber enthalten Pflanzen, die phylogenetisch einander sehr fern stehen.
Bereits LINNÉ hatte indessen auch versucht, natürliche Pflanzenfamilien aufzustellen (im Jahre 1738) und sie nach ihrer „Verwandtschaft“ anzuordnen. Solange aber an die Unwandelbarkeit der Spezies geglaubt wurde, hatte die Bezeichnung Verwandtschaft und Familie in einem System der Organismen nur eine mystische Bedeutung. Sie bedeutete tatsächlich weiter nichts als eine Zusammenstellung ähnlich aussehender Wesen. Erst durch die Deszendenzlehre hat das natürliche System der Organismen seine reale Grundlage gewonnen.
Das System, das für die nachfolgende Darstellung zugrunde gelegt werden soll, ist das von ALEXANDER BRAUN aufgestellte, von EICHLER, ENGLER, WETTSTEIN, MEZ und anderen weiter ausgebildete natürliche System.
Wir gliedern das Pflanzenreich in folgende vier Hauptgruppen:
Thallophyta, Thalluspflanzen.
Bryophyta, Moospflanzen.
Pteridophyta, Farnpflanzen.
Spermatophyta, Samenpflanzen.
Erste Abteilung. Thallophyten, Bryophyten, Pteridophyten.
Thallophyten, Bryophyten und Pteridophyten werden seit LINNÉ allgemein als Kryptogamen, die Samenpflanzen als Phanerogamen bezeichnet. Diesen beiden Hauptgruppen kommt indessen vom streng systematischen Standpunkt aus ungleicher Wert zu, denn die tiefer stehenden Vertreter der Phanerogamen nähern sich den höchstentwickelten Kryptogamen, nämlich den Farnpflanzen, aus denen sie hervorgegangen sind, entschieden mehr als diese den Moosen. Die Moose zeigen wie die Thallophyten noch einen Aufbau aus mehr oder weniger gleichartigen Zellen; beide Gruppen werden daher auch als Zellenpflanzen zusammengefaßt und den Gefäßpflanzen, die durch die Farnpflanzen und Samenpflanzen vertreten werden, gegenübergestellt. Da aber andererseits die Moose in mancherlei Beziehungen den Farnpflanzen näher stehen und mit diesen aus gemeinsamer Wurzel als gesondert weiter entwickelte Stämme hervorgegangen zu sein scheinen, so kann auch die Unterscheidung von Zellenpflanzen und Gefäßpflanzen nicht zur obersten Einteilung des Pflanzenreichs Verwendung finden.
Die Samenpflanzen oder Spermatophyten unterscheiden sich wesentlich durch ihre Verbreitung mittels Samen von den Kryptogamen, bei denen allgemein Sporen, das sind einzellige Keime, von der Mutterpflanze sich loslösen und den Ausgangspunkt für die Entwicklung eines neuen Individuums abgeben. Die Kryptogamen verdienen daher richtiger den Namen Sporenpflanzen. Bei den Samenpflanzen ist allerdings auch Sporenbildung vorhanden, allein die Sporenbehälter und Sporen, aus denen die Samen als vielzellige eigenartige Gebilde hervorgehen, entwickeln sich in Verbindung mit der Mutterpflanze weiter, und erst die Samen lösen sich von dieser ab.
Die Unterschiede zwischen Thallophyten, Bryophyten und Pteridophyten sind in Kürze folgende:
Die Thallophyten enthalten mannigfaltige Pflanzengestalten, die einen einzelligen oder einen mehrzelligen, mehr oder weniger reich verzweigten Thallus vorstellen. Die Fortpflanzung geschieht ungeschlechtlich oder geschlechtlich, meist ohne bestimmte Aufeinanderfolge beider Reproduktionsarten. Ein Generationswechsel ist nur bei höher stehenden Vertretern vorhanden.
Die Bryophyten und die Pteridophyten legen ihre Entwicklung in zwei regelmäßig miteinander abwechselnden Generationen zurück. Die ungeschlechtliche Generation bildet Sporen und wird daher Sporophyt genannt. Aus den Sporen geht die geschlechtliche Generation, der Gametophyt, hervor, der Geschlechtsorgane von charakteristischem Bau erzeugt; die männlichen heißen Antheridien, die weiblichen Archegonien. Aus der befruchteten Eizelle der Archegonien geht wiederum der Sporophyt hervor.
Bei den Bryophyten oder Moospflanzen stellt der Gametophyt stets einen Thallus vor, auch bei den höher stehenden Moosen, wo er zwar eine Gliederung in Stämmchen und Blättchen, aber noch keine echten Wurzeln und keine Leitbündel mit Gefäßen aufweist; der Sporophyt dagegen ist eine gestielte oder ungestielte, auf der geschlechtlichen Moospflanze halbparasitisch heranreifende Sporenkapsel.
Bei den Pteridophyten oder Farnpflanzen ist der Gametophyt ein kleiner Thallus, während der Sporophyt Gliederung in Stengel, Blätter und Wurzeln, mit echten Leitbündeln, also schon den Aufbau der Spermatophyten besitzt.
Die Moose und Farnpflanzen werden auf Grund des übereinstimmenden Baues ihrer weiblichen Sexualorgane, der Archegonien, auch als Archegoniaten vereinigt. Indessen treten diese Organe in etwas vereinfachter Form auch noch bei tiefer stehenden Spermatophyten (bei den meisten Gymnospermen) auf, so daß sich eine scharfe Abgrenzung der Archegoniaten von den höher stehenden Pflanzengruppen nicht durchführen läßt.
I. Thallophyta[288].
Die Thallophyten unterschied man früher in Algen oder Algae, Pilze oder Fungi und Flechten oder Lichenes. Algen sind Thallophyten, die Chromatophoren mit Farbstoffen, vor allem stets Chlorophyll, besitzen und dementsprechend zu selbständiger Ernährungsweise oder Autotrophie befähigt erscheinen, während die Pilze als heterotrophische Gewächse keine solchen Farbstoffe enthalten und saprophytische oder parasitische Lebensweise führen. Jedoch gibt es auch mixotrophe Algen, die nicht ausschließlich auf autotrophe Lebensweise angewiesen sind, sondern auch in mehr oder weniger hohem Maße organische Substanzen in ihrem Stoffwechsel verwerten können, also in fauligem Wasser gut gedeihen. Die Einteilung in Algen und Pilze hat nur physiologischen, keinen phylogenetischen Wert, da sie die Verwandtschaftsbeziehungen der einzelnen Klassen, in die beide Gruppen zerlegt werden müssen, nicht zum Ausdruck bringt. Der Thallus der früher als einheitliche Organismen betrachteten Flechten stellt eine Symbiose von Fadenpilzen mit Algen vor. Vom streng systematischen Standpunkt aus müssen die Flechtenpilze und die Flechtenalgen in die Klassen der ihnen nächstverwandten Organismen eingereiht werden; andererseits zeigen die Flechten so viel Übereinstimmendes in Bau und Lebensweise, daß eine zusammenfassende Behandlung im Anschluß an die Fadenpilze für unsere Zwecke vorzuziehen ist.
Die verwandtschaftlichen Beziehungen der 14 Klassen, in die wir die Thallophyten gliedern, bedürfen noch in vielen Punkten der Klärung und sollen nur mit Vorbehalt in folgender Zusammenstellung veranschaulicht werden:
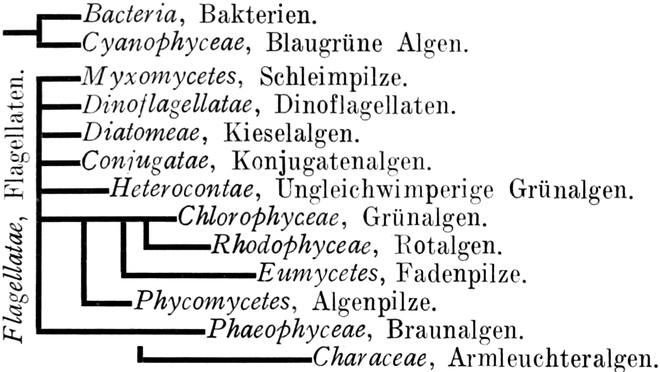
Zu den einfachsten Thallophyten gehören die Bakterien und die Cyanophyceen, die untereinander nähere Beziehungen aufweisen und die man daher auch als Schizophyta oder Spaltpflanzen zusammengefaßt hat. Obwohl einige Gründe für die Angliederung der Schizophyten an Flagellaten sprechen, erscheint es einstweilen noch angemessen, sie in besonderer Stellung den übrigen einfacheren Thallophyten gegenüber zu belassen, die mit mehr oder weniger großer Wahrscheinlichkeit auf Flagellaten als Ausgangsformen hinweisen. Die Flagellaten wurden und werden vielfach auch zu den niedersten Tieren gerechnet; in der Tat vereinigen sie pflanzliche und tierische Charaktere und sind auch als Ausgangsformen für niedere Tiere zu betrachten. Die Schleimpilze dürften als farblose Saprophyten ebenfalls von ihnen abstammen. Die Dinoflagellaten stellen nur einen weiter entwickelten Zweig der Flagellaten dar. Die einfachsten Formen der Heteroconten, der Grünalgen und der Braunalgen schließen an Flagellaten an, während dagegen eine direkte Verbindung der letzteren mit den Diatomeen und mit den Konjugaten auf größere Schwierigkeiten stößt.
Von der Hauptreihe der Grünalgen haben sich die Algenpilze abgezweigt; zweifelhaft ist die Anfügung der Rotalgen und der Fadenpilze, welche beide auf gemeinsame Wurzel zurückzugehen scheinen. Eine vorgerückte Stellung nehmen die Armleuchteralgen ein, die meist als höchst entwickelte Grünalgen aufgefaßt werden, in wichtigen Charakteren aber auch zu den Braunalgen einige Beziehungen aufzuweisen scheinen; ihr Ursprung ist uns rätselhaft.
Allgemein verbreiten und vermehren sich die Thallophyten durch ungeschlechtlich erzeugte Sporen, deren Bildungsweise große Mannigfaltigkeit aufweist. In vielen Fällen entstehen die Sporen durch Zellteilung im Innern von Zellen, die dann als Sporangien bezeichnet werden, in anderen Fällen entstehen sie durch Umbildung und Loslösung von Thalluszellen oder durch Zellsprossung. Die Sporen heißen Schwärmsporen, Zoosporen, wenn sie kontraktile Zilien besitzen, deren Schwingungen ihre Fortbewegung im Wasser bewirken; sie heißen Aplanosporen, wenn sie keine Zilien tragen. Im letzteren Falle können sie nackt sein bei Verbreitung im Wasser, oder mit Membran umgeben bei Verbreitung in der Luft.
Außer der ungeschlechtlichen ist auch geschlechtliche Fortpflanzung sehr verbreitet. Im einfachsten Falle besteht sie in Isogamie, d. h. in der Verschmelzung von zwei zwar äußerlich gleichgestalteten, physiologisch aber verschieden differenzierten Sexualzellen oder Gameten zu einer einzigen Zelle, der Zygote oder Zygospore. Die Organe, in denen die Gameten gebildet werden, heißen Gametangien. Planogameten sind mit Zilien begabt, Aplanogameten dagegen zilienlose Gametenzellen. Auf höheren Stufen ist die Isogamie in Heterogamie übergegangen; die Gameten sind in kleinere männliche und größere weibliche differenziert. Ist diese Differenzierung so weit vorgeschritten, daß wir männliche, meist mit Zilien versehene Zellen, Spermien (Spermatozoiden, Spermatozoen, Samenzellen), die in Antheridien erzeugt werden, und weibliche größere, reservestoffreichere, zilienlose, unbewegliche Zellen, Ovien (Oosphären, Eizellen), die in Oogonien entstehen, unterscheiden können, so sprechen wir von Eibefruchtung oder Oogamie. Die befruchtete Eizelle, die Zygote, wird als Oospore bezeichnet, wenn sie einen Dauerzustand eingeht; sie kann aber auch bei gewissen Gruppen ihre Entwicklung sofort beginnen. Man nimmt an, daß die Gameten aus ungeschlechtlichen Sporen phylogenetisch hervorgegangen sind. Gametangien, Oogonien, Antheridien sind bei den Thallophyten den Sporangien homologe Gebilde. Die sexuelle Fortpflanzung hat sich in verschiedenen Gruppen, also unabhängig mehrmals, herausgebildet. Parthenogenesis ist unter den Thallophyten verbreitet.
Während bei gewissen Thallophyten ausschließlich ungeschlechtliche, bei anderen nur geschlechtliche Fortpflanzung stattfindet, kommen bei vielen beide Formen der Fortpflanzung vor, sei es an derselben Pflanze neben- oder nacheinander, oder in einander ablösenden getrennten Generationen. Im allgemeinen ist aber bei den Thallophyten keine regelmäßige Aufeinanderfolge von ungeschlechtlichen und geschlechtlichen Generationen vorhanden, da äußere Faktoren auf die Art der Fortpflanzung von großem Einfluß sind[289]. Nur bei wenigen Gruppen (bei manchen Braunalgen, bei den Rotalgen und bei gewissen Fadenpilzen) folgt regelmäßig auf eine geschlechtliche Generation (Gametophyt) eine ungeschlechtliche (Sporophyt); ein solcher regelmäßiger Generationswechsel ist auch bei allen Archegoniaten vorhanden.
Bei der Kopulation zweier Sexualzellen erhält der Keimkern die doppelte Anzahl von Chromosomen; er wird diploid, während die Sexualzellen haploide Kerne besitzen (vgl. S. 172). Im Laufe der ontogenetischen Entwicklung muß also eine Reduktionsteilung der diploiden Kerne zu haploiden erfolgen. Wir unterscheiden somit eine haploide und eine diploide Phase im Entwicklungsgange der Gewächse. Die Reduktionsteilung erfolgt bei vielen Thallophytengruppen in der keimenden Zygote, kann aber auch selbst innerhalb eines Verwandtschaftskreises verschieden, an anderen Stellen einsetzen und ist somit ein Vorgang, der mit dem Beginn einer neuen Generation nicht notwendig verbunden zu sein braucht. Bei gewissen Braunalgen, Rotalgen und allen Archegoniaten erfolgt die Reduktion in den Sporangien, so daß hier regelmäßig der Gametophyt haploid, der Sporophyt diploid ausfällt. Die Wertigkeit der Kerne kann aber nicht als maßgebend für die spezifische Gestaltung der Generationen erachtet werden.
Die Keimzellen der von den Flagellaten abzuleitenden Thallophytenklassen, sowohl Schwärmzellen, als auch Gameten, sind in vielen Fällen zilientragende nackte Protoplasten von Flagellatencharakter. Selbst bei den Moosen und Farnen, sogar auch bei Cycadeen und Ginkgoaceen zeigt sich noch in der Gestalt der männlichen Gameten, wenn sie auch sekundär verändert sind, dieses Zurückgehen in der Ontogenese auf die phylogenetischen Ausgangsformen.
Die Bakterien stellen sehr einfach gebaute, einzellige oder fadenförmige Organismen dar, die des Chlorophyllfarbstoffs ermangeln und meist saprophytische oder parasitische Lebensweise führen. Sie sind in enormer Arten- und Individuenzahl über die ganze Erde, in der Atmosphäre, im Wasser, im Boden, ferner auf und in toten oder lebenden Pflanzen und Tieren verbreitet. Man bezeichnet sie auch als Spaltpilze oder Schizomycetes, weil die Vermehrung ihrer einzelligen Formen nur durch Zweiteilung oder Spaltung der Zellen sich vollzieht, eine Vermehrungsweise, die übrigens auch bei den anderen einzelligen Pflanzen vorkommt.
Die Zellen der Bakterien sind von einer dünnen Membran umgeben und enthalten ein meist farbloses Protoplasma, das bei Plasmolyse sich von der Wand ganz oder teilweise zurückzieht und das im Innern des Wandbelag seinen einzigen Saftraum oder auch mehrere Vakuolen umschließen kann. In den Protoplasten sind zwar körnige Gebilde in Ein- oder Mehrzahl, sog. Chromatinkörner, beobachtet, die sich durch Farbstoffe intensiv färben lassen und von verschiedenen Autoren als Zellkerne gedeutet werden; indessen ist es bis jetzt nicht gelungen, unzweifelhafte Kernteilung (Karyokinese) an ihnen nachzuweisen, so daß das Vorhandensein von Kernen noch nicht sichergestellt ist.
Die Bakterien sind zum größten Teil außerordentlich winzige Organismen, und es gehören zu ihnen überhaupt die kleinsten bekannten Lebewesen. So messen die kugeligen Zellen der kleinsten Arten im Durchmesser nur 0,0008 mm, die stäbchenförmigen Zellen des Tuberkelbazillus haben nur 0,0015 bis 0,004 mm Länge, die meisten Arten etwa 0,001 mm Breite und 0,005 mm Länge.
Die einfachsten Formen der Spaltpilze sind winzige kugelrunde Zellen, Kokken. Formen mit stäbchenförmigen Zellen werden als Bakterium oder als Bazillus bezeichnet, Stäbchen mit kurz schraubiger Krümmung heißen Vibrio, längere Schrauben Spirillum. Die einzelligen Kokken, Stäbchen, Vibrionen können nach der Teilung in Zellketten vereinigt bleiben. Häufig kommt es vor, daß die äußeren Zellmembranschichten gallertartig aufquellen und so die Zellen oder Zellketten in Gallerte eingebettet werden. Ein solcher Zustand heißt Zoogloea.
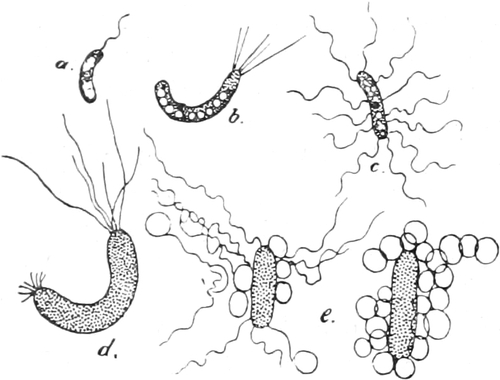
Fig. 294. Geißeltypen. a Vibrio cholerae. b, d Spirillum undula. d Entwicklung eines neuen Geißelbüschels bei der Teilung, c Bacillus Typhi, e Bacillus subtilis. Vergr. 2250. Nach A. FISCHER.
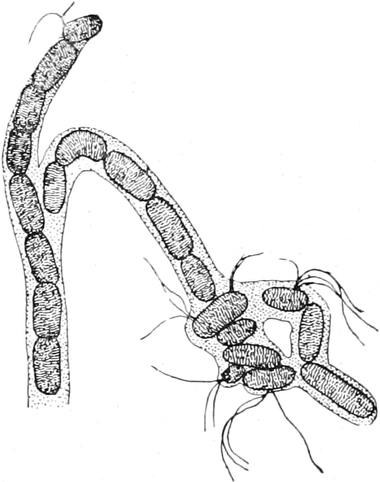
Fig. 295. Cladothrix dichotoma. Bildung der Schwärmstäbchen aus den Fadenzellen. Vergr. 1000. Nach A. FISCHER.
Diesen einzelligen, als Haplobakterien bezeichneten Formen stehen die Trichobakterien gegenüber, die meist einfache Zellfäden aufweisen (Leptothrix, Beggiatoa, Crenothrix), bei Cladothrix aber eine unechte Verzweigung der Fäden erreichen, die dadurch zustande kommt, daß eine Fadenzelle sich in der Längsrichtung geradlinig weiter teilt und dabei den über ihr gelegenen Teil des Fadens beiseite drängt.
Viele Bakterien sind durch Eigenbewegung ausgezeichnet, welche durch Schwingungen von feinen Plasmazilien vermittelt wird[291]. Diese Geißeln sind entweder über die Oberfläche verteilt (Heubazillus Fig. 296a, d; Typhusbazillus 294c; Tetanusbazillus 299e) oder sie entspringen von einem Punkte aus, entweder als Einzelgeißel oder als Geißelbüschel. Danach unterscheidet man peritriche, monotriche und lophotriche Bakterien. Eine polare Einzelgeißel hat der Cholerabazillus (Fig. 294a), ein polares Geißelbüschel Spirillum undula (Fig. 294b, d); ein seitenständiges Geißelbüschel die Schwärmzelle von Cladothrix (Fig. 295). Die Geißelbüschel können sich zu zöpfchenartigen Gebilden zusammendrehen; sie werden niemals eingezogen, sondern gehen vor der Sporenbildung oder durch ungünstige Einflüsse, oft unter vorheriger Einrollung (Fig. 294e), zugrunde.
Die Vermehrung und Verbreitung geschieht auf vegetativem Wege durch eine sehr ausgiebige Zweiteilung der Zellen, die bei gestreckten Formen stets quer zur Längsachse erfolgt, die Erhaltung der Art durch ungeschlechtliche Bildung von Dauersporen, die als Endosporen (Fig. 296c, 297e, f) entstehen, wohl überall in der Weise, daß die Spore im Zellplasma entweder in der Mitte oder näher einem Ende der Zelle sich abgrenzt und mit neuer Membran umgibt. Die Mutterzellmembran geht nach der Reife der Sporen durch Verquellen zugrunde. Sporen sind aber nicht bei allen Arten nachgewiesen.
1. Ordnung Haplobacteria. Einzellige Bakterien. Sie umfassen die Hauptmasse der Arten.
Obwohl ihr Formenkreis ein sehr einfacher ist, weisen ihre Arten eine ungemeine Mannigfaltigkeit in ihrem Stoffwechsel auf. Die meisten Bakterien haben Sauerstoff zu ihrer Atmung nötig wie die übrigen Pflanzen, sind also aërob; manche können aber auch ohne Sauerstoff sich weiterentwickeln, während gewisse Arten, wie z. B. die Buttersäurebakterien, der Starrkrampfbazillus, streng anaërob nur bei Abschluß von Sauerstoff gedeihen. Manche Bakterien erzeugen durch ihre Atmung beträchtliche Wärmemengen; darauf beruht die Selbsterhitzung von feuchtem Heu, Mist, Tabak, Baumwolle (Bacillus coli und calfactor. (Vgl. S. 241.)
Wir unterscheiden autotrophe, saprophytische und parasitische Arten, obwohl eine scharfe Trennung oft nicht möglich ist und die letztgenannten in Kulturen auf geeigneten Substraten auch saprophytische Lebensweise führen können.
Eine sehr bekannte saprophytische Art ist der Heubazillus, Bacillus subtilis (Fig. 296), der sich in dem Extrakt, den man durch Kochen von Heu gewinnt, in der Regel einstellt. Die Sporen bleiben trotz der Hitze dabei lebensfähig und keimen zunächst zu peritrich begeißelten, schwärmenden Stäbchen, die sich teilen und auch in kurzen Ketten zusammenhaften. An der Oberfläche der Flüssigkeit gehen die schwärmenden Stäbchen über in ruhende geißellose, die sich zu langen geschlängelten Ketten weiter teilen. Die Zellketten legen sich zu einer sog. Kahmhaut, einer besonderen Form von Zoogloeabildung zusammen. Nach Erschöpfung der Nährstoffe tritt dann Sporenbildung ein.
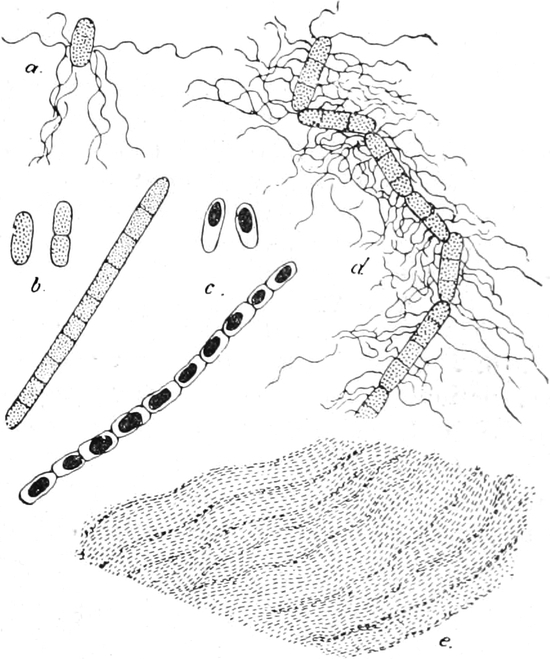
Fig. 296. Bacillus subtilis. a, d Bewegliches Stäbchen und Kette, b unbewegliche Stäbchen und Kette, c Sporen aus der Kahmhaut e. Vergr. a-d 1500, e 250. Aus A. FISCHER, Vorlesungen über Bakterien.
Zu den saprophytischen Bakterien gehören als wichtige Vertreter die zymogenen oder Gärungsbakterien und die saprogenen oder Fäulnisbakterien. Erstere oxydieren oder vergären hauptsächlich Kohlehydrate; letztere dagegen spalten stickstoffhaltige tierische und pflanzliche Substanzen, Eiweiß, Fleisch usw. unter Abscheidung übelriechender Gase. (Vgl. S. 238.)
Die Essigbakterien (Fig. 297a, b, e) oxydieren den Alkohol zu Essigsäure. Die Vergärung von Milchzucker zu Milchsäure wird durch den Formenkreis des Bacillus acidi lactici (Fig. 297d) bewirkt; die Bildung von Buttersäure aus verschiedenen Kohlehydraten bei Abschluß von Sauerstoff erfolgt durch Clostridium butyricum (Fig. 297 e) u. a., während gewisse Sumpfbakterien (Fig. 297 f) bei Sauerstoffabschluß die Vergärung der Zellulose zu Methan oder auch zu Kohlensäure und Wasserstoff besorgen. Der häufigste Fäulniserreger auf Fleisch, Eiweiß usw. ist Bacillus proteus.
Streptococcus (Leuconostoc) mesenterioides (Fig. 298), der Froschlaichpilz der Zuckerfabriken, wandelt den Zucker in Schleim um; seine kugeligen Zellen teilen sich zu rosenkranzartigen Ketten und umgeben sich mit dicken Gallerthüllen, deren Bildung in zuckerfreien Substraten unterbleibt.
Die Purpurbakterien, die sich auf in Wasser faulenden Substanzen bei Sauerstoffmangel und bei Zutritt von Licht entwickeln, enthalten nach MOLISCH[292] einen grünen und einen roten Farbstoff (Bakteriochlorin und Bakteriopurpurin). Letzterer spielt nach BUDER eine Rolle für photosynthetische Vorgänge; die Purpurbakterien scheinen die absorbierten Lichtstrahlen zu einer Assimilation der Kohlensäure unter Einbeziehung des freiwerdenden Sauerstoffs in den Stoffwechsel auszunutzen. Auch andere Pigmentbakterien scheiden Farbstoffe in ihren Zellen oder nach außen ab. Letzteres ist der Fall bei Bacillus prodigiosus, dessen ellipsoide, peritriche Stäbchen auf Milch oder Gebäck fuchsinrote Kolonien bilden und so die Veranlassung zu dem Wunderglauben an blutende Hostien gegeben haben.
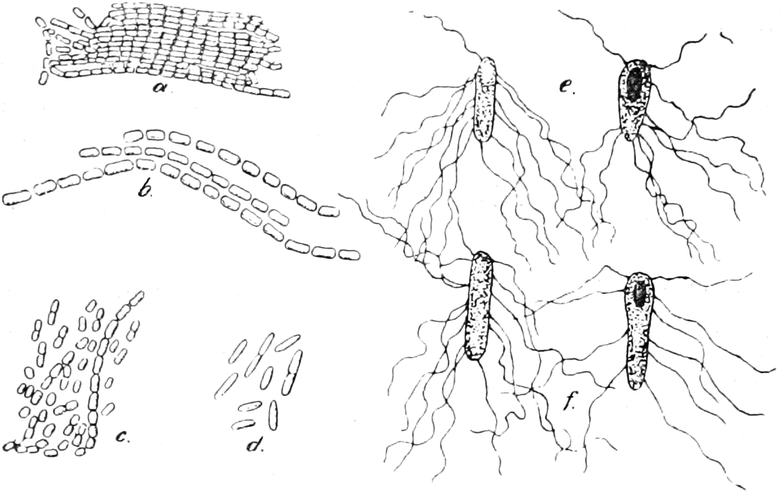
Fig. 297. Gärungsbakterien a-c Essigbakterien, a Bacillus aceti, b Bac. Pasteurianus, c Bac. Kützingianus, d Bac. acidi lactici, Milchsäurebazillus, e Clostridium butyricum, Buttersäurebakterie, f Plectridium paludosum, Gärungsbakterie aus Sumpfwasser. Vergr. 1000. Aus A. FISCHER, Vorles. über Bakt.
Die photogenen Bakterien erzeugen in ihren Zellen eine Substanz, die bei Oxydation leuchtet. Bacterium phosphoreum ist die verbreitetste, auf Fleisch vorkommende und sein Leuchten verursachende Leuchtbakterie[293].
Gewisse Bodenbakterien (Clostridium Pasteurianum, Azotobacter chroococcum) und Meeresbakterien sind imstande, den freien Stickstoff zu assimilieren.[294] Zu diesen stickstoffbindenden Formen gehören auch die symbiotisch in den Wurzelknöllchen der Leguminosen lebenden, unter der Bezeichnung Bacillus radicicola zusammengefaßten Arten von Bazillen, die im freien Zustand bewegliche, lophotrich begeißelte Stäbchen vorstellen (Fig. 249 u. 250), ferner Mycobacterium Rubiacearum, das analoge Bakteriengallen an den Blättern tropischer Rubiaceen erzeugt und mit diesen Pflanzen in dauernder Symbiose lebt[295]. Andererseits gibt es auch im Boden und sogar im Meere denitrifizierende Bakterien, die Nitrate und Nitrite unter Abscheidung von freiem Stickstoff zersetzen (vgl. S. 240).
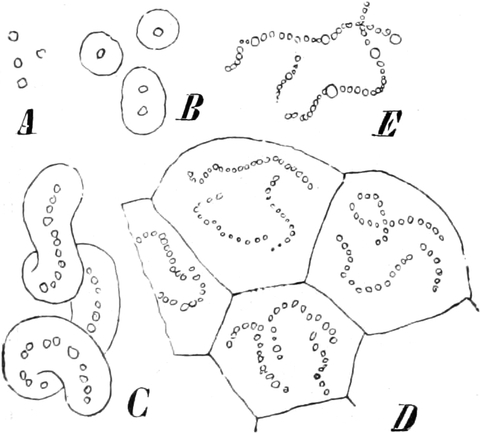
Fig. 298. Streptococcus mesenterioides. A Zellen ohne Gallerthülle. B, C Bildung der Gallertkörper. D Teil einer erwachsenen Zoogloea. E Rosenkranzartige Fäden der Zoogloea. Vergr. 620. Nach VAN TIEGHEM.
Die parasitischen Bakterien leben entweder in Pflanzen oder in Tieren. Als Bakteriosen erkannte Pflanzenkrankheiten sind z. B. die krebsartigen Geschwülste, die das von SMITH entdeckte, auch für Menschen pathogene Bacterium tumefaciens an höheren Pflanzen erzeugt, ferner die durch Bacillus phytophthorus hervorgerufene Schwarzbeinigkeit der Kartoffel[296].
Von den zahlreichen pathogenen Bakterien, deren schädliche Einwirkung auf die Gewebe und das Blut des tierischen und menschlichen Körpers durch Abscheidung von giftigen Substanzen, Toxinen, bedingt ist, sind als wichtigste Erreger von Infektionskrankheiten folgende zu nennen:
Staphylococcus pyogenes (Fig. 299 a), regellose oder traubenförmige Haufen von Kokken bildend, ist der häufigste Eitererreger, ebenso der regelmäßig bei Wundrose oder Erysipel und anderen Eiterungen auftretende, in Ketten wachsende Streptococcus pyogenes (Fig. 299 b), während Micrococcus (Diplococcus) Gonorrhoeae (Fig. 299 c u. 300 a), dessen semmelförmige Kokken paarweise nebeneinander liegen, den Tripper verursacht. Im Blut und in den Organen milzbrandiger Tiere findet sich der durch R. KOCH bekannt gewordene Bacillus Anthracis (Fig. 299 d, 300 c), dessen relativ große Stäbchen auch in kurzen Ketten vorkommen und in Kulturen reichlich Endosporen, ähnlich wie der Heubazillus bilden. Der im Erdboden verbreitete Bacillus Tetani (Fig. 299 e) ist der Erreger des Wundstarrkrampfes. Seine geraden, peritrich begeißelten Stäbchen wachsen nur in den Wunden selbst; sie bilden die Sporen in ihren keulig angeschwollenen Enden. Bacillus influenzae zeigt sehr zarte Kurzstäbchen, Bacillus pestis kleine dickere unbewegliche Stäbchen. Der LÖFFLERsche Bacillus Diphtheriae (Fig. 299 f) besteht aus kleinen, zuweilen an den Enden kolbig verdickten Stäbchen. Der KOCHsche Tuberkelbazillus Mycobacterium tuberculosis (Fig. 299 g, 300 b), der sich in allen tuberkulösen Geweben und Sekreten und auch im Sputum findet, ist für gewöhnlich ein schlankes Stäbchen, kann aber auch verzweigte Formen bilden; er ist unbeweglich, bildet keine Sporen und wird daher mit gewissen anderen Arten zu einer besonderen Familie der Mycobacteriaceen vereinigt[297]. Der Unterleibstyphus wird durch die peritrich begeißelten Stäbchen des Bacillus typhi (Fig. 299 h) verursacht. Die größte Ähnlichkeit mit letzterem hat der meist unschädliche, stets im Darm des Menschen anwesende Kolonbazillus, Bacillus coli (Fig. 299 i). Ebenfalls durch R. KOCH entdeckt wurde der Kommabazillus der asiatischen Cholera Vibrio cholerae (Fig. 299 k). Dieser findet sich nur im Darm in Form kurzer, schraubig gekrümmter Stäbchen mit polarer Einzelgeißel, nicht selten auch von längeren Schraubenketten.
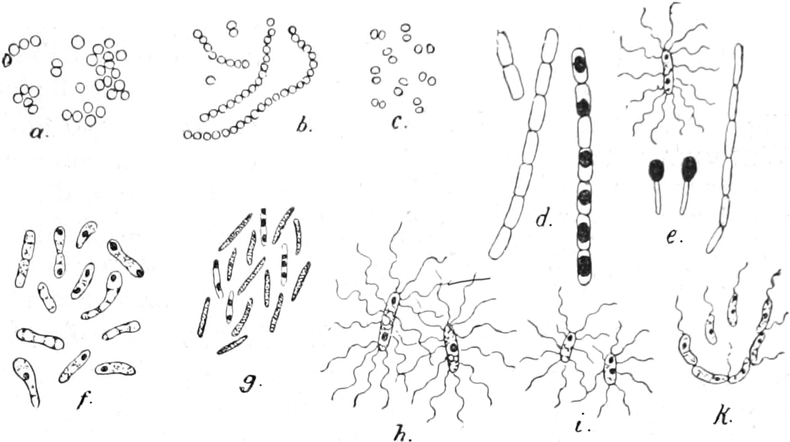
Fig. 299. Pathogene Bakterien. a Eiterkokken, b Erysipelkokken, c Tripperkokken, d Milzbrandbazillen, e Starrkrampfbazillen, f Diphtheriebazillen, g Tuberkelbazillen, h Typhusbazillen, i Kolonbazillen, k Choleravibrionen. Vergr. etwa 1500. Aus A. FISCHER, Vorles. über Bakt.
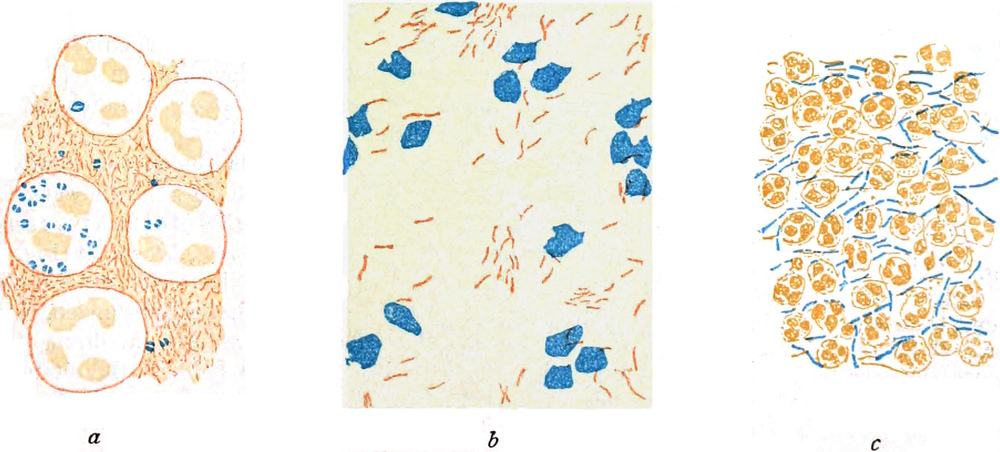
Fig. 300. Färbungspräparate (aus ZIEGLERs Lehrbuch der allgemeinen Pathologie). a Tripperkokken im Trippersekret, Schleim- und Eiterkörperchen mit Kokken (Methylenblau-Eosin), Vergr. 700; b Tuberkelbazillen im Sputum eines Lungenkranken (Fuchsin-Methylenblau), Vergr. 400; c Milzbrandbazillen in Milzbrandpusteln (Methylenblau-Vesuvin), Vergr. 350. Aus A. FISCHER, Vorles. über Bakterien.
Außer diesen bösartigen Parasiten gibt es aber auch zahlreiche mehr oder weniger harmlose, auf den Schleimhäuten, in der Mundhöhle (Fig. 80), im Darm lebende Arten, so z. B. die im Magen und Darm des Menschen auftretende Sarcina ventriculi, welche aus würfelförmigen Klumpen von Kokken besteht.
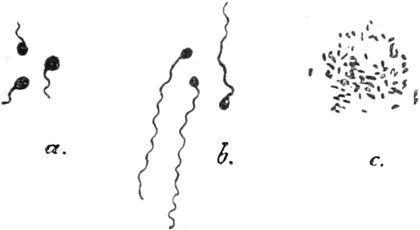
Fig. 301. Salpeterbakterien nach WINOGRADSKY. a Nitrosomonas europaea von Zürich, b Nitrosomonas javanensis von Java, c Nitrobakter aus Quito. Vergr. 100. Aus A. FISCHER, Vorl. über Bakt.
Den saprophytischen und parasitischen Formen stehen die autotrophen gegenüber, die sich trotz ihres Mangels an Chlorophyll ganz selbständig aus anorganischen Verbindungen ernähren. So verhalten sich die im Boden lebenden Nitritbakterien (Nitrosomonas) und Nitratbakterien (Nitrobacter), von denen erstere Ammoniak zu salpetriger Säure und letztere die salpetrige Säure zu Salpetersäure oxydieren. Beide benutzen als Kohlenstoffquelle die Kohlensäure, kommen also gänzlich ohne organische Substanzen aus (Fig. 301, vgl. auch S. 219).
2. Ordnung Trichobacteria. Fadenbakterien. Die Fadenbakterien umfassen nur einige Gattungen. Sie stehen in ihrer Organisation den fadenförmigen Cyanophyceen nahe und können, wenigstens zum Teil, von diesen als farblose Formen abgeleitet werden. Die meisten Arten leben saprophytisch im Wasser, einige auch autotroph.
Überall verbreitet in unreinen Gewässern ist die morphologisch am höchsten stehende Cladothrix dichotoma. Ihre feinen, aus stäbchenförmigen Zellen bestehenden, unecht verzweigten (vgl. S. 67), festsitzenden Fäden bilden schleimige Überzüge an Algen, Steinen oder Holzwerk. Sie vermehren sich durch zilientragende Schwärmzellen, die durch Teilung aus den Fadenzellen entstehen und durch Verquellen der Fadenscheide frei werden (Fig. 295). Nach dem Schwärmen setzen sich die Zellen fest und wachsen zu neuen Fäden heran.
Sehr häufig ist ferner der Brunnenfaden, Crenothrix polyspora, mit unverzweigten, festsitzenden, aber leicht zerbrechlichen Fäden, die Eisenoxydhydrat in ihren Scheiden speichern können. Er entwickelt sich oft in solchen Massen in Wasserleitungen, daß die Röhren sich verstopfen und das Trinkwasser ungenießbar wird. Bei Crenothrix zerfallen die Fadenzellen in der Scheide durch Teilung in zahlreiche geißellose, rundliche Zellen, welche die Vermehrung besorgen.
In Schwefelquellen und am Boden von Gewässern, wo durch Fäulnis organischer Stoffe Schwefelwasserstoff auftritt, siedeln sich zahlreiche Schwefelbakterien[298] an, unter denen die fadenförmige Beggiatoa alba (Fig. 302) am verbreitetsten ist. Die Schwefelbakterien ernähren sich auch autotroph, also ohne organische Substanzen, indem sie Ammoniumsalze und Kohlensäure in ihrem Stoffwechsel verwerten. Den für ihre Lebenstätigkeit nötigen Schwefelwasserstoff oxydieren sie zu Schwefel, den sie in rundlichen Tröpfchen gleichsam als Reservestoff aufspeichern und zu Schwefelsäure oxydieren, die weiterhin durch Karbonate neutralisiert wird. Bei fortschreitendem Schwefelwasserstoffmangel werden immer mehr Schwefeltröpfchen gelöst, die Querwände in den Fäden treten deutlicher hervor, die Fadenzellen runden sich schließlich ab und lösen sich voneinander los. So können die Beggiatoen sich leicht nach neuen Standorten verbreiten. Zu den Schwefelbakterien gehören auch einige Haplobakterien. (Vgl. S. 238.)
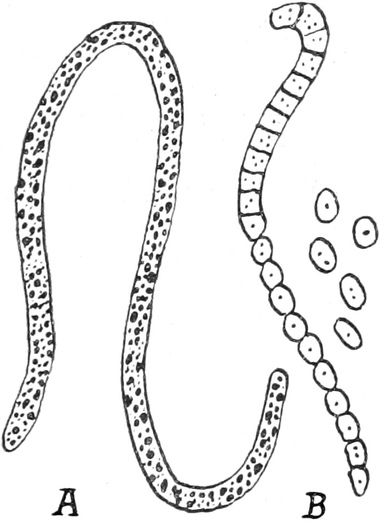
Fig. 302. Beggiatoa alba. A Faden mit Schwefeltröpfchen, Querwände nicht sichtbar. B Faden bei Mangel an Schwefelwasserstoff, in die Gliederzellen zerfallend. Vergr. 600. Nach DÜGGELI.
Zu den Eisenbakterien[299] gehört die in Wiesensümpfen und Bächen häufige, fadenförmige Chlamydothrix (Leptothrix) ochracea. Sie oxydiert kohlensaures Eisenoxydul zu Eisenoxydhydrat, das in den Fadenscheiden aufgespeichert wird, und kommt bei dieser Ernährungsweise mit Spuren organischer Nahrung aus. Andererseits gedeiht sie aber auch ohne Eisen recht gut in organischen Nährlösungen. Andere Eisenbakterien, so nach LIESKE Spirophyllum ferrugineum, sind rein autotroph. Sie gedeihen nur in Wasser, in dem außer geringen Mengen anorganischer Salze Eisenoxydulkarbonat gelöst ist. Sie oxydieren das Eisenoxydul zu Eisenoxydhydrat und speichern dieses auf. Diese Oxydationen scheinen die Energie für die Assimilation der Kohlensäure zu liefern.
Die Cyanophyceen sind einfach organisierte, teils einzellige, teils fadenförmige, blaugrün gefärbte Thallophyten, deren Zellen oder Fäden häufig durch Gallerte, die durch fortgesetzte Verquellung der Außenschichten ihrer Membranen entsteht, zu Kolonien vereinigt erscheinen. In zahlreichen Arten über die ganze Erde verbreitet, bewohnen sie die Gewässer oder vegetieren auf feuchtem Schlammboden, an feuchten Felsen oder Baumrinden in gallertartigen Massen oder feinfädigen Überzügen. Sie sind wie die rein grünen Algen autotroph.
Der Protoplast besitzt ein hohlzylindrisches oder hohlkugeliges peripherisches Chromatophor, welches außer Chlorophyll einen blauen Farbstoff, das Phykocyan, nach dem die Gruppe ihren Namen trägt, bei gewissen Arten außerdem auch rotes Phykoerythrin in verschiedener Menge enthält und als Assimilationsprodukte Glykoproteïde, die aus Glykose gebildet werden, liefert. Das innerhalb des Chromatophors befindliche, als Zentralkörper bezeichnete, farblose Plasma enthält chromosomenähnliche Gebilde; es ist als Zellkern gedeutet worden. Besondere Einschlüsse der Zellen sind ferner die aus Proteïnsubstanzen bestehenden Cyanophycinkörner, die vorwiegend in den Chromatophoren liegen. Die Membranen bestehen aus Zellulose und Pektinstoffen.
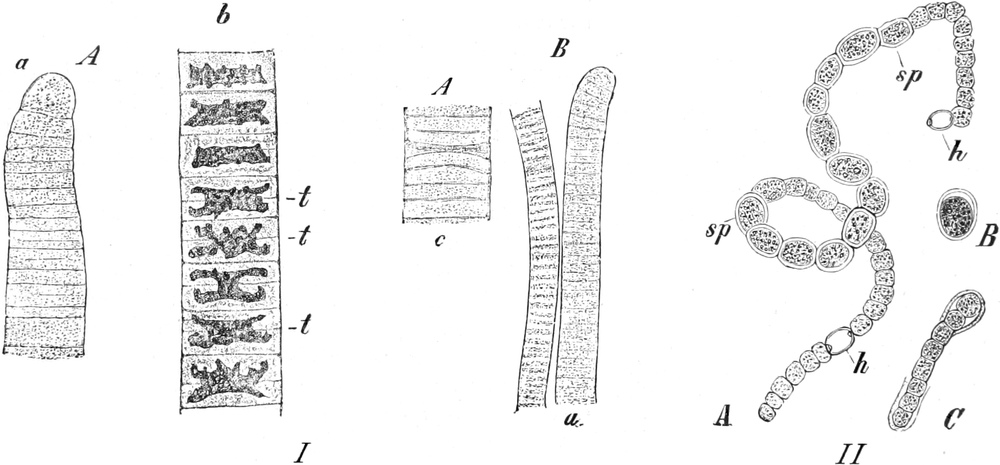
Fig. 303. I A Oscillaria princeps. B Oscillaria Froelichii. a Fadenenden, b und c Stücke aus dem inneren Teil des Fadens, t Zellen in Teilung. Nach Fixierung und Färbung. Vergr. von A 1080, von B 540. Nach STRASBURGER. II Nostoc Linckii, in Wasser schwimmende Art. A Fadenstück mit zwei Heterozysten h und einer Anzahl von Sporen sp. B Spore in Keimung. C Junger Faden aus der Spore hervorgegangen. Vergr. 650. Nach BORNET.
Die Vermehrung geschieht ausschließlich durch Zellteilung. Bei vielen Arten werden Sporen als Dauerzustände gebildet durch Vergrößerung und starke Wandverdickung einzelner Zellen (Fig. 303 II), also in anderer Weise als bei den Bakterien.
Wie die Bakterien als Spaltpilze, Schizomyceten, so werden die blaugrünen Algen als Spaltalgen, Schizophyceen, infolge ihrer Vermehrung durch Teilung oder Spaltung, bezeichnet. Beide Gruppen werden vielfach zu einer Klasse der Spaltpflanzen, Schizophyta, vereinigt. In der Tat zeigen sie vieles Gemeinsame, indessen ist zu bemerken, daß die für Bakterien charakteristischen Geißeln und Endosporen den Spaltalgen fehlen.
Die einfachsten Cyanophyceen bestehen aus blaugrünen rundlichen Zellen, so die Arten der Gattung Chroococcus. Bei Gloeocapsa (Fig. 35), deren Arten meist in gallertigen Überzügen an feuchten Felsen und Mauern auftreten, bleiben die Zellen nach der Teilung durch geschichtete Gallerthüllen zu mehrzelligen Kolonien verbunden.
Unter den fadenförmigen Arten, die teils unverzweigt sind, teils unechte Verzweigung aufweisen (Fig. 85) und die kein Spitzenwachstum zeigen, sind die überall im Wasser oder auf Schlammboden häufigen Oscillaria-Arten die einfachsten, da sich hier die meist von einer dicken Scheide eingeschlossenen Fäden aus gleichartigen scheibenförmigen Zellen zusammensetzen (Fig. 303 I). Die Fäden zergliedern sich in kurze Fadenstücke, Hormogonien, die aus der Scheide nach außen gelangen, der Vermehrung dienen und zu neuen Fäden heranwachsen. Die Gattung Nostoc besitzt rosenkranzförmige Fäden (Fig. 303 II); ihre Arten leben auf feuchtem Boden oder im Wasser in Form von unregelmäßig gestalteten oder kugeligen Gallertkolonien. Bei manchen fadenförmigen Cyanophyceen kommt es zur Ausbildung besonderer, wohl als Reservestoffbehälter dienender Zellen mit gelblichem Inhalt, Grenzzellen oder Heterozysten (Fig. 303 II, h), die nach einer Ruhezeit unter günstigen Umständen wieder ergrünen und keimen können.
Die fadenförmigen Blaualgen, besonders die Oscillarien, aber auch die Hormogonien von Nostoc und verwandten Gattungen, führen auf festen Unterlagen photo- und chemotaktische Kriechbewegungen aus. Das gewöhnlich unter Drehung um die Längsachse erfolgende Vorwärtsgleiten der Fäden kommt dadurch zustande, daß die Zellen aus Poren ihrer Längswände Schleim, ein nicht doppelbrechendes Kohlehydrat, nach rückwärts abscheiden[301].
Gewisse Cyanophyceen leben an der Oberfläche von Teichen und bedecken sie mit einer „Wasserblüte“; sie verdanken ihr Schwimmvermögen nach KLEBAHN winzigen Gasvakuolen, die im Zellplasma gelagert sind[302]. Eine in wärmeren Meeren schwimmende Art ist Trichodesmium erythraeum, das als „Seeblüte“ dem Wasser rote Färbung verleiht (Rotes Meer).
Manche Blaualgen beteiligen sich an der Zusammensetzung der aus Pilzen und Algen bestehenden Flechten. Einige Arten leben endophytisch in Gewebehöhlungen anderer Pflanzen, so Anabaena in Azolla; Nostoc-Arten in gewissen Lebermoosen, in Wasserlinsen (Lemna), in den Wurzeln von Cycas; Nostoc punctiforme als fakultativer Parasit im Rhizom von Gunnera[303].
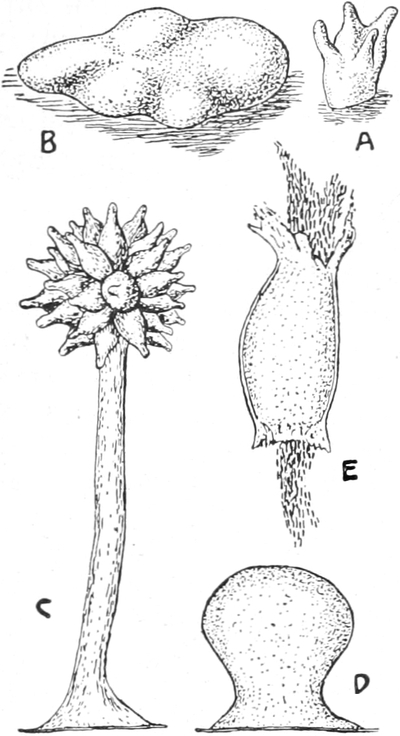
Fig. 304. A Myxococcus digitatus, hellroter Fruchtkörper auf Mist. Vergr. 120. B Polyangium primigenium, roter Fruchtkörper auf Kaninchenmist. Vergr. 40. C Chondromyces apiculatus, rotgelbe Fruchtkörper auf Antilopenmist. D Fruchtkörperanlage. Vergr. 45. E Einzelne Zyste in Keimung. Vergr. 200. A, B nach QUEHL, C-E nach THAXTER.
Unter Vorbehalt reihen wir hier die Polyangideae (Myxobacteriaceae)[312] an, die zuerst durch THAXTER genauer bekannt geworden sind und von ihm zu den Bakterien gerechnet wurden, nach VAHLE den Schleimpilzen näher stehen sollen, von JAHN aber wieder zu den Schizophyten gestellt werden und vielleicht als farblos gewordene Organismen aus dem Formenkreis der blaugrünen Algen hervorgegangen sein mögen. Sie sind sehr verbreitet und leben saprophytisch auf Mist von Tieren. Im vegetativen Stadium sind sie plasmodienähnliche Schwärme von stäbchenförmigen kleinen Zellen, die, in Schleim eingebettet, zusammenhalten, kriechende Bewegungen ausführen und schließlich meist lebhaft gefärbte Fruchtkörper bilden, in denen die Stäbchenzellen zu kugeligen Sporen sich umwandeln. Die Fruchtkörper, mit Wandung versehene Zysten, sind ungestielt oder erheben sich einzeln oder in Gruppen auf Stielen, deren Substanz ebenso wie die Zystenwände aus dicht nebeneinander gelagerten, von der Sporenbildung ausgeschalteten Stäbchenzellen hervorgeht. Bei der Keimung treten die aus den Sporen entstehenden Stäbchenschwärme aus der aufbrechenden Zyste hervor (Fig. 304).
Die Flagellaten bilden eine ungemein formenreiche Gruppe einzelliger, wasserbewohnender Organismen, die pflanzliche und tierische Eigenschaften in sich vereinigen und als Ausgangsformen einerseits für niedere Thallophyten, andererseits für Protozoën betrachtet werden können.
Der kontraktile oder amöboid sich bewegende Protoplast dieser Organismen ist nach außen durch eine dichtere Plasmahautschicht abgegrenzt. Er besitzt eine oder mehrere Zilien (Geißeln, Flagellen) als Bewegungsorgane, einen Zellkern, pulsierende Vakuolen und bei vielen Vertretern wohlausgebildete grüne oder gelbbraune Chromatophoren, vielfach auch einen roten Augenfleck. Als Assimilationsprodukt tritt meist Öl auf, aber auch Stärke oder andere Kohlehydrate. Andere Formen sind farblos und ernähren sich ausschließlich saprophytisch oder auch zugleich animalisch. Der Protoplast mancher Flagellaten, besonders der farblosen, aber auch gefärbter Arten, kann nämlich Formänderungen und kriechende Bewegungen ausführen (Amöbenzustand) und auch fadenförmige dünne Fortsätze, Pseudopodien (Rhizopodien), aussenden und wieder einziehen, durch welche die Aufnahme von Nahrungskörpern vermittelt wird (Fig. 305, 311).
Die meisten Vertreter leben als nackte freie Zellen, andere in mehr oder weniger komplizierten, durch Gallerte zusammengehaltenen Zellkolonien; gewisse Gattungen zeichnen sich aus durch die Bildung von eigenartigen, abstehenden, gestielten oder ungestielten, hornartigen Gehäusen, durch Kieselskelett oder durch Kalkhüllen.
Die Vermehrung geschieht auf rein vegetativem Wege durch Teilung der Zellen allgemein der Länge nach. Bei vielen Arten werden als Ruhestadien geißellose, mit Membran umgebene Dauerzellen oder Zysten erzeugt, die vielfach bei ihrer Keimung nach Teilung ihres Inhalts mehrere Tochterzellen ausschwärmen lassen (Fig. 310).
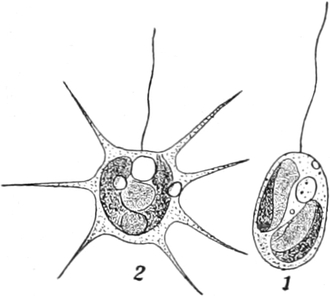
Fig. 305. Chrysamoeba radians. Im Süßwasser; mit 1 Zilie und 2 gelbbraunen Chromatophoren. 1 Gewöhnliche Form. 2 Amöboider Zustand mit Pseudopodien. Nach KLEBS.
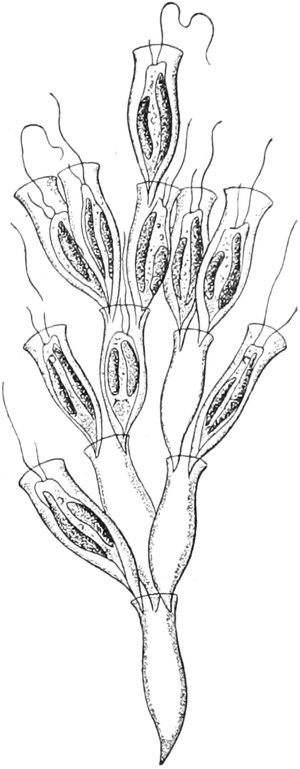
Fig. 306. Dinobryon Sertularia. Gehäuse und Kolonie bildend. Im Süßwasserplankton. Vergr. 600. Nach SENN.
Eine wichtige Flagellatengruppe sind die Chrysomonadinen, zu denen u. a. Chrysamoeba (Fig. 305) und das Kolonien bildende Dinobryon (Fig. 306) gehören. Sie zeichnen sich durch radiären Bau und durch meist gelbbraune, seltener durch rote oder blaugrüne Chromatophoren aus, die ein im Plasma abgelagertes besonderes Kohlehydrat (Leucosin) bilden. Als eine höher stehende Chrysomonadine gilt Hydrurus foetidus (Fig. 307), der in Form von Zellkolonien, bis 30 cm langer verzweigter, gallertartiger Fäden, an Steinen, in fließendem Wasser lebt. In der Fadengallerte liegen zahlreiche geißellose, durch Längsteilung sich vermehrende Zellen eingebettet. Diese liefern schließlich ausschlüpfende, tetraëdrisch gestaltete, einzilige Flagellatenschwärmer, die sich wieder festsetzen und zu neuen Gallertfäden heranwachsen. Auch einige andere verwandte Flagellaten sind zu solchen algenartigen Lebensformen vorgeschritten, bei denen das ruhende Stadium vorherrscht, während das bewegliche der Vermehrung und Ausbreitung dient. An die Chrysomonadinen schließen sich zwei eigenartige Familien mariner sehr kleiner Planktonorganismen an, die Silicoflagellaten[306], die sich durch ringförmige oder hutförmige, durchbrochene Kieselskelette auszeichnen (Fig. 308 A), und die Coccolithophoriden[307], die eine Hülle aus Kalkplättchen und Kalkstachelchen besitzen und sich durch meist zu 4 gebildete Schwärmsporen vermehren (Fig. 308 B, C). Aus dem Verwandtschaftskreise der Chrysomonadinen scheinen die Diatomeen und auch die Heteroconten hervorgegangen zu sein, so daß diese drei Gruppen auch als Chrysophyta zusammengefaßt werden können. Ihre gemeinsamen Merkmale sind u. a. die sehr häufige oder stete Zusammensetzung der Gehäuse- und Zellmembranen aus zwei Schalenstücken, die Verkieselung der Membran und die häufige Ungleichheit der Geißeln.
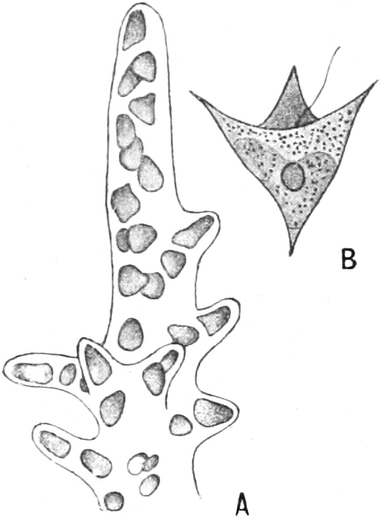
Fig. 307. Hydrurus foetidus. A Spitze eines Gallertlagerzweiges nach BERTHOLD. B Schwärmzelle nach KLEBS. Aus PASCHER, Flagellaten.
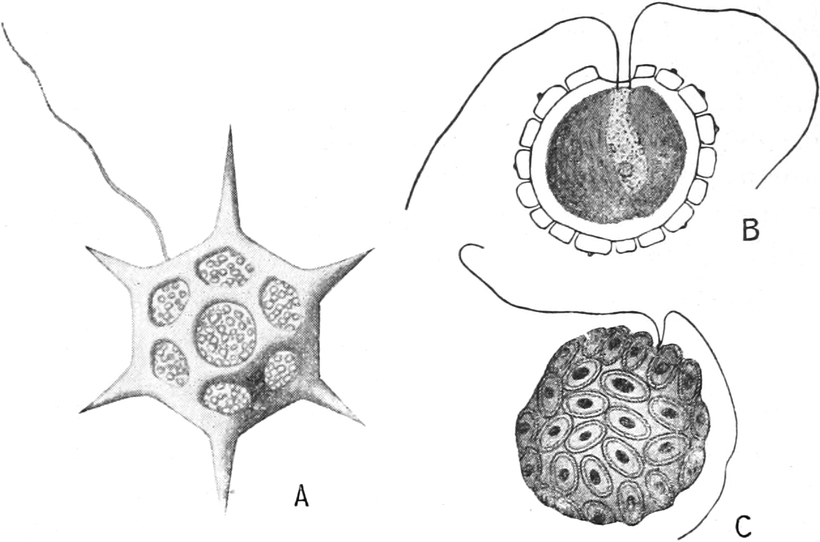
Fig. 308. A Distephanus speculum nach BORGERT. B, C Calyptrosphaera insignis aus der Adria, B im optischen Durchschnitt mit 2 braungelben Chromatophoren, C Außenansicht. Vergr. 1600. Nach SCHILLER.
Die etwas höher als die Chrysomonadinen differenzierten, meist gelbbraun, doch auch grün oder blaugrün gefärbten Cryptomonadinen unterscheiden sich von ihnen durch dorsiventrale, vorn schräg abgestutzte Protoplasten mit zwei ungleich langen, aus einer furchenartigen Vertiefung entspringenden Geißeln (Fig. 309). Zu ihnen gehört auch Chrysidella (Zooxanthella). Sie lebt in Symbiose mit zahlreichen Meerestieren (Radiolarien, Actinien usw.), in deren Plasma ihre gelben Ruhezellen liegen. Aus der Ruhezelle schlüpft später der Protoplast als begeißelter Flagellat aus. In die Verwandtschaft der Cryptomonadinen gehören die Dinoflagellaten. Auch schließen sich an sie einige Gattungen (Phaeocystis, Phaeothamnion u. a.) an, die den größten Teil ihres Lebens in unbeweglichen Gallertkolonien oder Zellverbänden verbringen und bereits an Braunalgen erinnern, aber nur mit Zweifel als Vorstufe zu solchen gerechnet werden können.
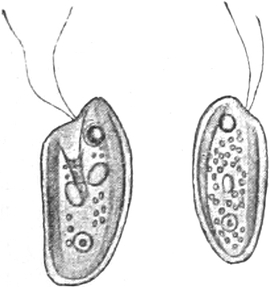
Fig. 309. Cryptomonas erosa. Vergr. 650. Nach STEIN.
Unter den mit grünen Chromatophoren versehenen Flagellaten ist der Ausgang für die Chlorophyceen zu suchen.
Die Eugleninen[308] sind eine hochstehende grüne Flagellatengruppe. Euglena-Arten (Fig. 310 A) treten oft in Dorfteichen in Form einer grünen „Wasserblüte“ auf. Nahe verwandt mit ihnen sind ähnlich gestaltete, aber farblose saprophytische Formen. Euglena gracilis kann sogar durch Kultur in organischen Lösungen unter Lichtabschluß in eine hyaline Dunkelform mit Leukoplasten übergeführt werden. In dieser Gruppe scheint zum ersten Male bei Flagellaten sexuelle Fortpflanzung, Kopulation zweier gleichgestalteter Gameten vorzukommen; jedoch bedürfen die Angaben noch weiterer Bestätigung.
An die Flagellaten mit gefärbten Chromatophoren schließen wir die zahlreichen farblosen, saprophytisch oder animalisch lebenden Formen an, die aus ersteren hervorgegangen sein dürften. Für gewisse Vertreter läßt sich sogar noch nahe Verwandtschaft mit gefärbten auf Grund übereinstimmender Zellstrukturen nachweisen.
Bei den Pantostomatinen geschieht die Aufnahme von Nahrungskörperchen durch die ganze Oberfläche des Protoplasten meist mittels Pseudopodien (Fig. 311), bei den Protomastiginen meist nur an einer Mundstelle, bei den Distomatinen an zwei Mundstellen. Zur zweiten Gruppe gehören auch gewisse im Blut und im Darm von Tieren lebende Arten, die zum Teil Erreger gefährlicher tropischer Krankheiten sind, so Trypanosoma brucei, das die Tsetsekrankheit des Rindviehs, und T. gambiense (Fig. 312), das die Schlafkrankheit beim Menschen verursacht; beide werden durch Fliegen der Gattung Glossina übertragen.
Wir dürfen annehmen, daß aus farblosen Flagellaten die Myxomyceten ihren Ausgang genommen haben, ferner daß auch die niederen Protozoën (Rhizopoden) hier ihren Anschluß nach unten finden.
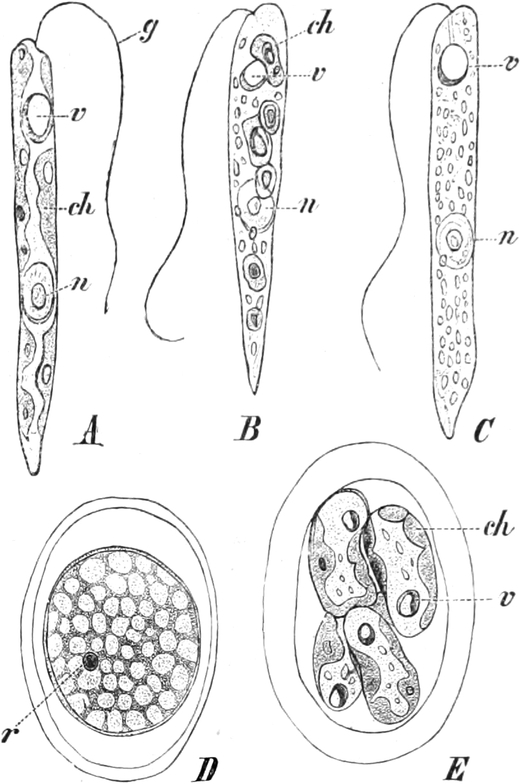
Fig. 310. Euglena gracilis. A Form mit grünen Chromatophoren ch, Zellkern n, Vakuole nebst rotem Augenfleck v, Geißel g. B Halbsaprophytische Form mit kleinen grünen Chromatophoren. C Farblose saprophytische Form, bei Lichtabschluß in Nährlösung gezogen. D Dauerzyste der Form C, r roter Augenfleck. E Keimung der Dauerzyste der Form A in vier später austretende Tochterzellen. A, C Vergr. 360, B 650, D, E 1000. (Nach ZUMSTEIN.)
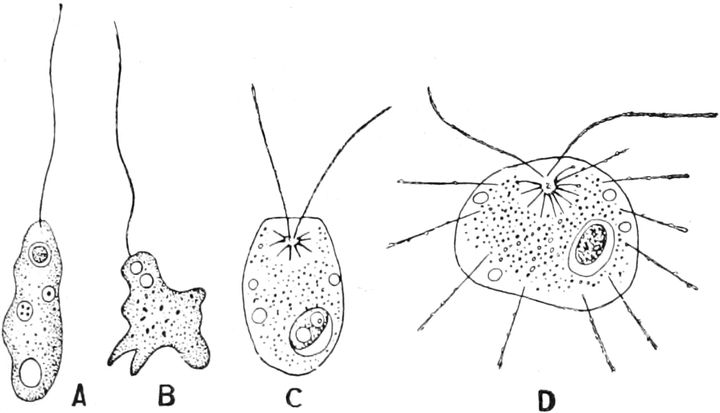
Fig. 311. Mastigamoeba invertens. A freischwimmend, B Amöbenzustand. Vergr. 1033. Dimorpha mutans, C mit eingezogenen, D mit ausgestreckten Pseudopodien. In einer Vakuole ein aufgenommenes Nahrungskörperchen. Vergr. 666. Nach LEMMERMANN.
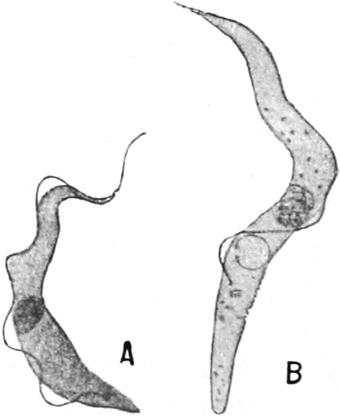
Fig. 312. Trypanosoma gambiense. A aus dem Blut infizierter Affen. Geißel eine undulierende Membran bildend. B aus der Fliege Glossina. Geißel im Innern. Nach MINCHIN.
Die Schleimpilze bilden eine eigenartige, von Flagellaten abgeleitete Gruppe niederer Thallophyten; sie nehmen ebenfalls eine Mittelstellung zwischen Pflanzen und Tieren ein und werden daher auch als Mycetozoa oder Pilztiere bezeichnet. Zunächst sei das Verhalten der umfangreichsten Ordnung, der Myxogasteres, dargestellt, die in zahlreichen Arten über die ganze Erde verbreitet sind. Im vegetativen Zustande bestehen diese Schleimpilze aus nackten, saprophytisch sich ernährenden Protoplasmamassen, den Plasmodien, welche zahlreiche kleine Zellkerne enthalten, des Chlorophylls vollständig ermangeln und als Reservestoff keine Stärke, sondern Glykogen bilden. Die Plasmodien (Fig. 4) finden sich mit Vorliebe auf dem Boden der Wälder, auf abgefallenen Blättern, auf und in faulendem Holz. Sie nehmen auch feste Nahrung auf, kriechen unter Formänderung und Verzweigung im Substrat umher und gelangen dort zu den für ihre Ernährung günstigsten Stellen hauptsächlich vermöge ihrer Befähigung zu chemotaktischen, hydrotaktischen und negativ phototaktischen Bewegungen. Vor der Sporenbildung aber ändern sich diese Reizbarkeiten; das Plasmodium kriecht dann aus dem feuchten Substrat dem Licht entgegen und wandelt sich je nach den Gattungen in einen einzigen oder in zahlreiche, dicht nebeneinander stehende Fruchtkörper um. Jeder Fruchtkörper (Sporangium) bildet an seiner Peripherie eine Hülle (Peridium) und in seinem Innern zahlreiche kleine, mit Membran umkleidete Sporen. Bei vielen Gattungen kommt es auch zur Ausbildung eines Capillitiums (Fig. 313 A, B, 314 B), das entweder aus freien oder aus netzförmig verbundenen feinen Röhrchen oder Fasern besteht und aus dem zwischen den Sporen befindlichen Plasma hervorgeht. Bei der Fruchtreife bricht das Peridium des Sporangiums auf; das Capillitium lockert sich, streckt sich hervor und die Sporen werden durch seine hygroskopischen Bewegungen und durch den Wind ausgestäubt. Die Gattung Ceratiomyxa verhält sich insofern einfacher, als ihre Fruchtkörper keine Hüllen besitzen, sondern die Sporen an der Oberfläche auf kleinen Stielchen tragen.
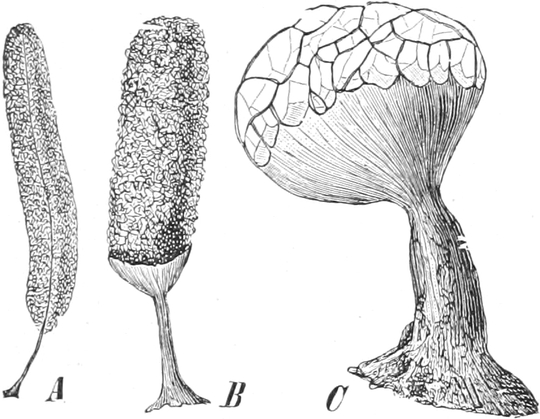
Fig. 313. Reife geöffnete Fruchtkörper nach Entleerung der Sporen. A Von Stemonitis fusca. Vergr. 10. B Von Arcyria punicea. Vergr. 12. C Von Cribraria rufa. Vergr. 32.
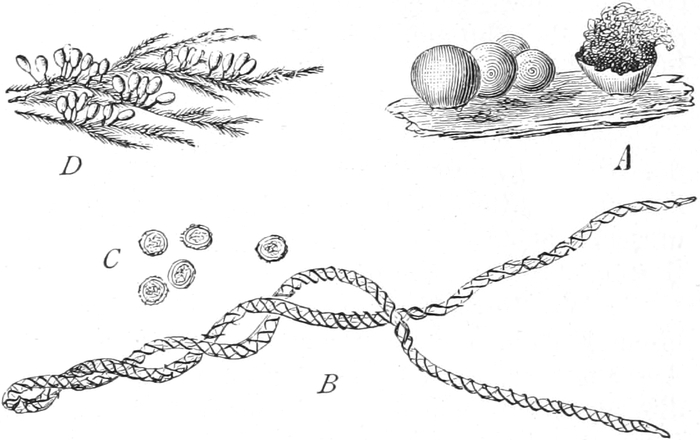
Fig. 314. A-C Trichia varia. A Sporangien geschlossen und geöffnet. Vergr. 6. B und C Capillitiumfaser und Sporen. Vergr. 240. D Leocarpus fragilis. Gesellige Einzelsporangien auf Moos. Nat. Gr.
Die Sporen (Fig. 315, Chondrioderma) keimen im Wasser oder auf nassem Substrat. Der aus der Sporenhaut austretende Protoplast erzeugt an seinem vorderen Ende nur eine einzige lange Zilie oder Geißel als Bewegungsorgan und wird so zu einer Schwärmspore (Fig. 315 e–g); sie besitzt einen Zellkern am vorderen Ende und eine pulsierende Vakuole am hinteren Ende. Schon innerhalb der Sporenhaut kann eine Zellteilung erfolgen, so daß dann zwei Schwärmsporen aus ihr entlassen werden. Die Schwärmsporen können sich bei gewissen Arten noch durch Zweiteilung vermehren. Nach einiger Zeit verlieren sie ihre Zilien und gehen in den Zustand der Myxamöben (Fig. 315 i, k) über. Die Amöben vermehren sich ebenfalls durch Teilung (Fig. 316 A, B). Unter ungünstigen Lebensbedingungen umgeben sie sich mit Membran und bilden Ruhezustände, sogenannte Mikrozysten, die unter günstigen Bedingungen wieder Schwärmsporen austreten lassen. Die Myxamöben verschmelzen nach JAHN[310] paarweise miteinander, wobei auch ihre haploiden Kerne kopulieren (Fig. 316 C).
Die so durch einen Sexualakt entstandenen einkernigen Amöbozygoten vereinigen sich zu größeren mehrkernigen Plasmodien. Diese nehmen auch noch weitere haploide Amöben auf, verdauen sie aber in Vakuolen(Fig. 316 D). Schließlich schreiten sie zur Fruchtkörperbildung. Die Kerne der Plasmodien sind diploid und erfahren wiederholte mitotische Teilungen (Fig. 316 E). Ihre letzte Teilung vor der Sporenabgrenzung ist eine Reduktionsteilung, wodurch die Zahl der Chromosomen wieder auf die Hälfte verringert wird. Jeder so entstandene haploide Tochterkern wird zum Kern einer Spore. Die nicht zur Sporenbildung verwendeten Kerne gehen zugrunde. Bei Ceratiomyxa können die Sporen außer ihrem normalen Kern auch noch einen degenerierenden enthalten. Aus dem ersteren entstehen hier durch zweimalige Teilung in der reifen Spore vier Kerne, die sich bei der Keimung nochmals teilen, so daß schließlich acht Schwärmsporen aus einer Spore hervorgehen.
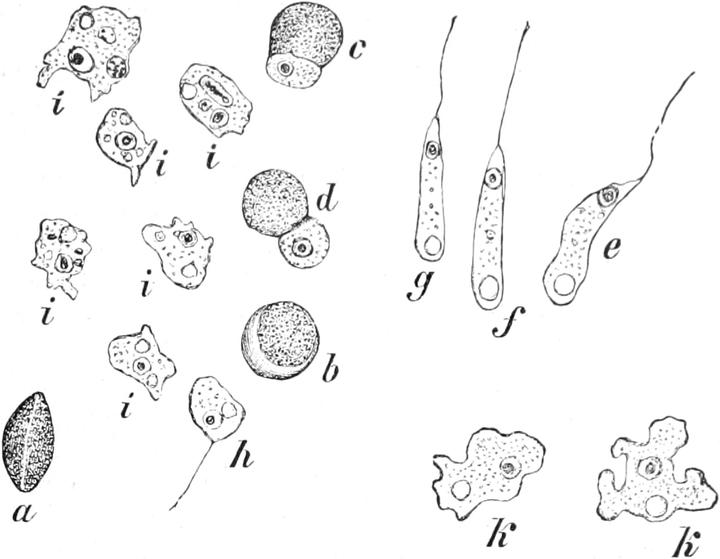
Fig. 315. Chondrioderma difforme. a eine trockene Spore, b eine geschwellte Spore, c und d Austritt des Inhaltes aus der Spore, e, f und g Schwärmsporen, h Übergang der Schwärmspore zur Myxamöbe, i jüngere, k ältere Myxamöben. Vergr. 540. Nach STRASBURGER. (Vgl. Fig. 4, S. 10.)
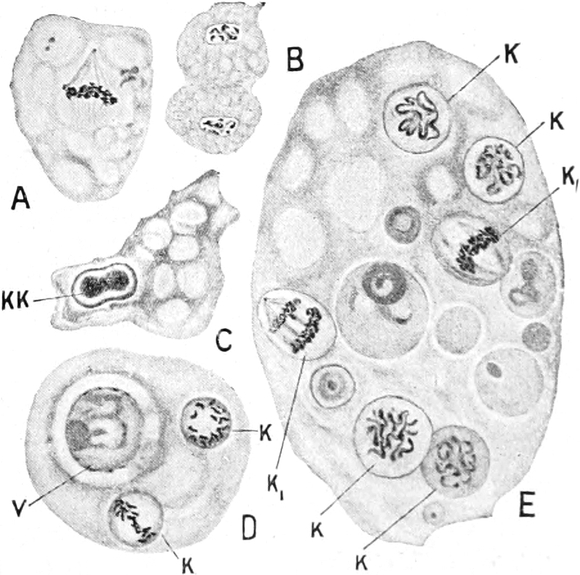
Fig. 316. Physarum didermoides. A, B Amöben in Teilung. C Kopulation zweier haploider Amöben, kk die beiden Kerne in Verschmelzung. D Zweikerniges Plasmodium, in der Verdauungsvakuole eine haploide Amöbe. E Sechskerniges Plasmodium in Kernteilung (k1). Mit Verdauungsvakuolen. Nach JAHN.
In ihren Schwärmsporen und Myxamöben weisen die Myxomyceten auf flagellatenartige Organismen als ihre Ausgangsformen hin; auch sind plasmodienartige Zellfusionen bereits bei gewissen Flagellaten nachgewiesen.
Die stattlichsten Plasmodien, oft von über 30 cm Durchmesser, von lebhaft gelber Farbe und rahmartiger Beschaffenheit, bildet Fuligo varians (Aethalium septicum), die als sog. Lohblüte im Sommer auf feuchter Gerberlohe sehr verbreitet ist. Auf trockenem Substrat können diese Plasmodien unter Zerfall in zahlreiche, behäutete Zellen zu kugeligen oder strangartigen Dauerzuständen, sog. Sklerotien, sich umwandeln, die bei Zutritt von Feuchtigkeit wieder in die bewegliche Form übergehen. Die Plasmodien der meisten Schleimpilze besitzen solches Eintrocknungsvermögen und können somit ungünstige Perioden überdauern. Schließlich wird das Plasmodium zu einem gelblichen oder braunen, kuchenförmigen Fruchtkörper, der eine stark kalkhaltige Hülle besitzt, im Innern durch zahlreiche Wandungen gefächert ist, von einem fädigen Capillitium mit unregelmäßigen, Kalkkörnchen enthaltenden Blasen durchzogen wird und zahlreiche violettschwarze Sporen umschließt. Dieser Fruchtkörper ist somit aus zahlreichen verschmolzenen Einzelsporangien zusammengesetzt, während bei den meisten übrigen Schleimpilzen die Sporangien getrennt ausgebildet werden.
Bau und Beschaffenheit der Sporangien geben die Merkmale zur Unterscheidung der einzelnen Formen ab. Die meist braunen oder ockergelben Sporangien sind kugelig, oval oder auch zylindrisch, gestielt (Fig. 313, 314 D) oder ungestielt (Fig. 314 A). Gewöhnlich öffnen sie sich durch Absprengung oder Zerfall des oberen Teiles der Wandung, während der untere als Becher zurückbleibt (Fig. 313 B, 314 A); bei Cribraria (Fig. 313 C), deren Fruchtkörper kein Capillitium enthält, wird der obere Teil gitterartig durchbrochen, bei Stemonitis (Fig. 313 A) hingegen zerfällt das ganze Peridium, und das Capillitium entspringt einer Columella, der Fortsetzung des Stieles.
Die Ordnung der Plasmodiophoraceae[311] enthält einige wenige parasitäre Pilze, als Typus die Plasmodiophora Brassicae, die die sog. Kohlhernie an Brassica-Arten: knollenförmige Verdickungen am Strunk und an den Nebenwurzeln der befallenen Kohlpflanzen verursacht. Ihre Myxamöben leben in den Zellen dieser Wucherungen, und zwar in den Vakuolen des lebendigen Plasmas; sie zehren den Inhalt der Wirtszelle auf und verschmelzen zu Plasmodien, die schließlich die zahlreichen von Chitinmembranen umhüllten Sporen liefern. Im Plasmodium vollzieht sich vor der Sporenbildung eine der Reduktion der Chromosomenzahl dienende Kernteilung, die die Kerne für die Sporen liefert. Die Sporen werden bei der Verwesung der Pflanze frei und keimen wie bei Chondrioderma; die Myxamöben dringen wieder in die Wurzeln junger Pflanzen ein. Eine Peridiumbildung findet also nicht statt, so daß der Pilz einen einfacher organisierten oder infolge der parasitären Lebensweise in der Sporangienbildung reduzierten Schleimpilz vorstellt.
Die systematische Stellung der Ordnung ist noch zweifelhaft, da sie in einigen zytologischen Merkmalen Ähnlichkeit mit den zu den Phycomyceten gerechneten Chytridiaceen aufweist.
Die Dinoflagellatae oder Peridineen schließen sich an gewisse Flagellaten als weiter entwickelte Gruppe enge an, so daß sie auch zu diesen selbst gestellt werden könnten. Sie leben als einzellige, freischwimmende Organismen, teils im Süßwasser, überwiegend aber im Meere, wo sie zusammen mit Diatomeen einen wichtigen Bestandteil des Phytoplanktons abgeben. Ihre Zellen sind ausgezeichnet durch den Besitz von zwei langen Zilien, die in der Mitte der Bauchseite in einer Längsfurche entspringen; die eine Zilie ist nach hinten gestreckt, die andere dagegen legt sich wellig gebogen in eine den Körper umziehende Querfurche (Fig. 317). Der Protoplast besitzt einen Zellkern, Vakuolen verschiedener Art, zahlreiche gelbbraune Chromatophoren, die mehrere Farbstoffe enthalten. Als Assimilationsprodukt tritt Stärke oder Öl auf. Während bei den Gymnodiniaceen (Fig. 318 d) die Zellen nackt sind, ist dagegen bei den Peridiniaceen eine Zellulosewand vorhanden, die sich aus polygonalen, meist zierlich gezeichneten, von Poren durchbrochenen Platten zusammensetzt; die Querfurche wird von einer gürtelförmigen Plattenreihe eingenommen (Fig. 317).
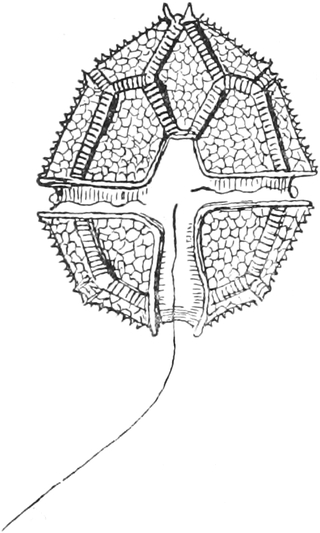
Fig. 317. Peridinium tabulatum. Nach SCHILLING.
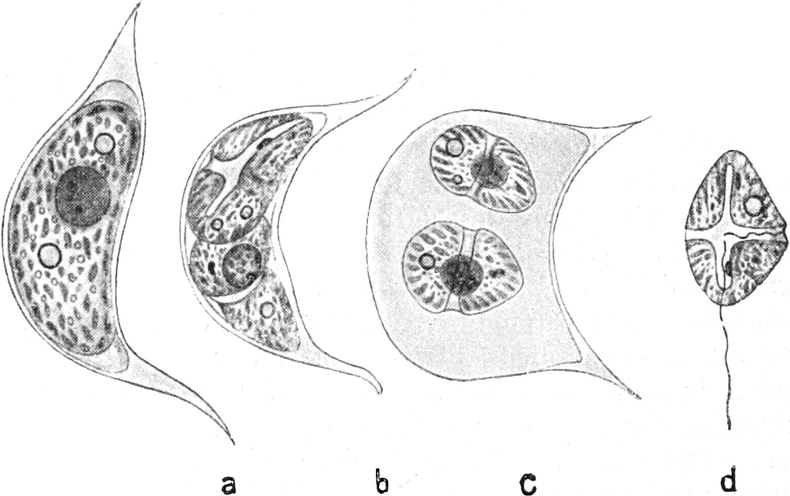
Fig. 318. Cystodinium Steinii. a Zyste, b Teilung in zwei Schwärmzellen, c Zyste in Quellung, d befreiter Schwärmer. Vergr. 480. Nach KLEBS.
Bei vielen Planktonperidineen (Fig. 319) zeichnen sich die Platten durch besondere Flügelbildungen aus, oder die Zellen besitzen lange hornförmige Fortsätze, Einrichtungen, die das Schweben und Steuern im Wasser ermöglichen[314].
Unter den Dinoflagellaten gibt es auch farblos gewordene, somit saprophytisch lebende Formen, deren Chromatophoren noch als Leukoplasten nachweisbar sind. Bei einigen Formen ist sogar tierische Lebensweise nachgewiesen, so bei dem im Süßwasser lebenden Spirodinium hyalinum, dessen Protoplast zum Zwecke der Nahrungsaufnahme die Geißeln verliert und zu einer, kleine Algenzellen aufnehmenden und verdauenden Amöbe wird.
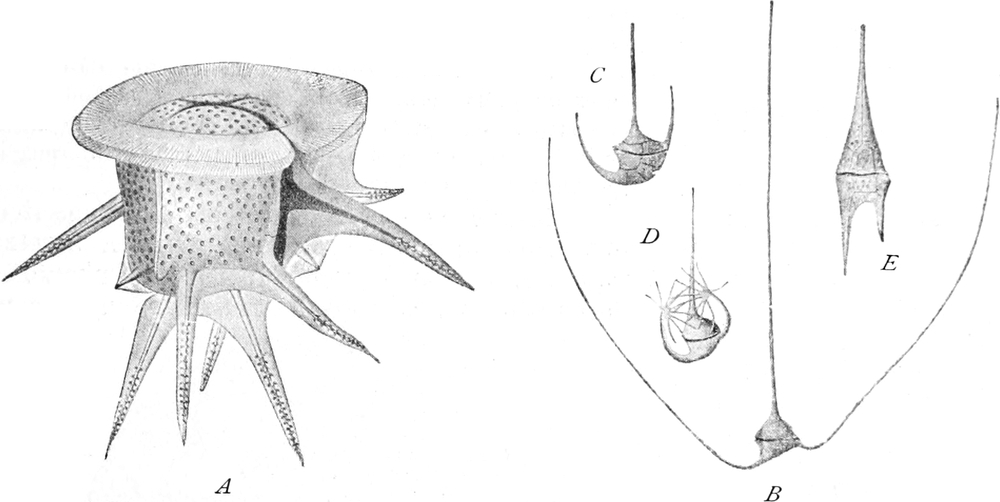
Fig. 319. Planktonperidineen. A Ceratocorys horrida var. africana, Ind. Ozean. Vergr. 250. B Ceratium tripos intermedium var. aequatoriale, Ind. Ozean. Vergr. 62. C Ceratium tripos gibberum und D Ceratium palmatum, Atl. Ozean. Vergr. 62. E Ceratium furca, Atl. Ozean. Vergr. 125. Nach G. KARSTEN.
Gewisse marine Peridineen (z. B. Ceratium tripos, Peridinium divergens) besitzen Leuchtvermögen; sie haben einen Hauptanteil am Meeresleuchten[293].
Die Vermehrung geschieht durch Zweiteilung meist im beweglichen Zustande der Zellen. Bei gewissen Gattungen (Peridinium, Cystodinium, [Fig. 318]) gehen die beweglichen Zellen kürzere oder längere Ruhezustände ein, bilden geißellose Zysten, in denen die Teilung erfolgt; die Tochterzellen treten dann aus der verquellenden Zyste als Schwärmzellen aus. Endlich kann auch das bewegliche Stadium ganz unterdrückt werden, und die beiden anfangs nackten Tochterzellen werden als behäutete geißellose und unbeweglich bleibende Zellen aus der Mutterhülle entlassen (Hypnodinium).
Einige Gattungen (Ceratium) bilden dickwandige Dauerzysten innerhalb des alten Membranpanzers.
Sexuelle Fortpflanzung ist bei Dinoflagellaten nicht mit Sicherheit nachgewiesen[315].
Fossile Dinoflagellaten sind zuerst aus der Kreideformation bekannt geworden.
Die Diatomeen (Bacillariaceae) stellen eine ungemein reichhaltige Klasse von einzelligen Algen vor, die teils im Süßwasser, teils im Meere, teils auf nassem Boden, meist in großer Menge gesellig vegetieren.
Die Zellen leben einzeln oder in Kolonien, entweder freischwimmend oder auf dünnen, aus Poren ausgeschiedenen Gallertstielchen festsitzend (Fig. 320). Bei gewissen Arten bleiben die Zellen in Bändern oder Zickzackketten durch kurze Gallertpolster vereinigt, oder sie sind in festsitzende schlauchförmige Gallertröhren eingeschlossen, die bei der im Meere lebenden Gattung Schizonema sich büschelig verzweigen. Der Umriß der Zellen ist höchst mannigfaltig, kreisrund, elliptisch, stabförmig, keilförmig, gerade oder gebogen, oft regelmäßig bilateral symmetrisch. Sehr charakteristisch ist die Verkieselung der aus Pektinstoffen bestehenden Zellmembran und ihre Zusammensetzung aus zwei Schalen, von denen die eine wie der Deckel einer Schachtel über die andere übergreift. Die Zelle bietet daher zwei verschiedene Ansichten dar, je nachdem man sie von der Schalenseite oder von der Gürtelseite betrachtet (Fig. 79).
Die Seitenwände beider Schalen sind durch die unter ihren Rändern sich ansetzenden Gürtelbänder gebildet; bei gewissen Gattungen wird die Gürtelseite noch durch Einfügung von ring- oder schuppenförmigen Zwischenbändern verlängert.
Häufig ist die Membran der Schalenseiten mit Querrippen, Warzen oder Gruben besetzt und vielfach auch von offenen Porenkanälen durchbohrt, welche der Gallertausscheidung dienen. Beim Glühen der Zelle auf einem Glimmerplättchen bleibt das Kieselskelett der Membran mit allen Strukturen zurück, beim Herauslösen der Kieselteile mit Flußsäure aber ebenso das Pektingerüst.
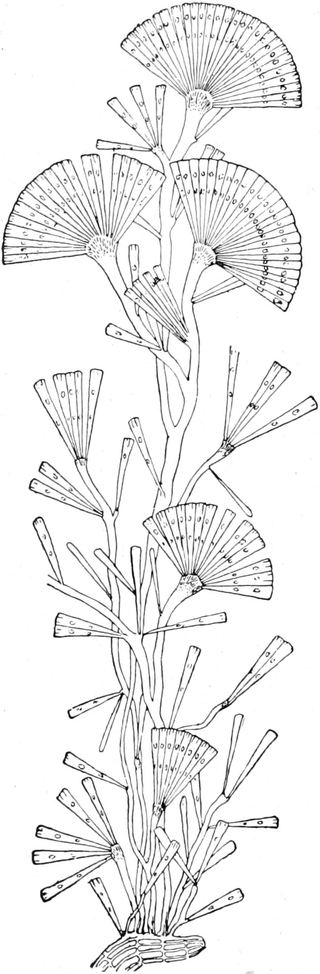
Fig. 320. Licmophora flabellata. Diatomeen-Kolonie mit verzweigten Gallertstielen. Nach SMITH, aus GOEBEL, Organographie.
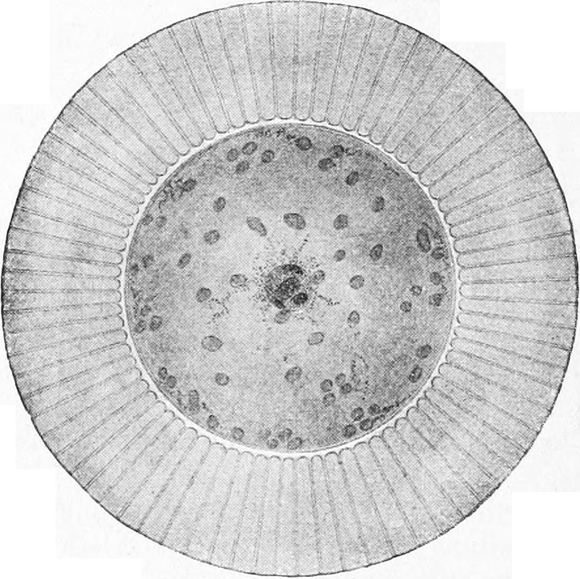
Fig. 321. Planktoniella Sol. Atl. Ozean. Scheibenförmige Planktondiatomee mit hohlem, von der Gürtelseite entspringendem Schwebeflügel. Plasma mit Kern und zahlreichen Chromatophoren. Vergr. 322. Nach G. KARSTEN.
Die Diatomeenzelle enthält einen Zellkern (Fig. 79) und entweder ein oder zwei bis vier (Fig. 324) große, flache, oft gelappte oder auch zahlreiche (Fig. 321) kleinere, durch Chlorophyll und gelbes Phykoxanthin braungelb gefärbte Chromatophoren, die häufig Pyrenoide führen. Im Zellplasma finden sich gewöhnlich einige Tropfen von fettem Öl, das an Stelle der Stärke als Assimilationsprodukt auftritt.
Die Diatomeen vermehren sich durch Zweiteilung, die sich immer nur nach einer Richtung hin vollzieht. Die beiden Schalen werden dabei durch den sich vergrößernden Plasmakörper an den Gürtelbändern auseinander geschoben: jede der beiden Tochterzellen erzeugt eine neue Schale, welche unter die von der Mutterzelle übernommene Schale mit ihren Rändern eingreift; dann trennen sich die Tochterzellen voneinander. Die beiden Schalen einer Zelle sind somit ungleichaltrig. Diese Art der Membranbildung hat, da die verkieselten Wände nicht wachstumsfähig sind, zur Folge, daß stets eine der Tochterzellen fortschreitend kleiner wird, und dies geht so fort bis zur Erreichung eines gewissen Minimums der Zellgröße. Alsdann tritt in der Regel die Bildung von Auxosporen ein, die mehrmals größer sind als die Zellen, aus denen sie hervorgegangen sind, und die bei ihrer Weiterentwicklung somit die Anfangsgröße der Zellen wieder herstellen.
Die sexuelle Fortpflanzung besteht in Kopulation gleichgestalteter Gameten.
Die Diatomeen umfassen zwei Ordnungen, Centricae und Pennatae.
Die Auxosporen wachsen bei den Centricae, die sich durch zentrischen Bau der Schalen auszeichnen, ohne vorhergehenden Kopulationsvorgang aus vegetativen Zellen heran, dagegen bei den mit fiedriger Schalenskulptur versehenen Pennatae aus den durch Gametenkopulation hervorgegangenen Zygoten. Die Pennaten haben diploide vegetative Zellen, und ihre Reduktionsteilung erfolgt bei der Bildung der Gameten, während die Centricae haploid sein dürften und schon bei der Teilung der Zygoten, die hier, soweit bekannt, durch Verschmelzung begeißelter Gameten gebildet werden, ihre einfache Chromosomenzahl erhalten. Die beiden Kieselalgengruppen zeigen somit scharfe Unterschiede.
1. Ordnung. Diatomeae centricae. Die Schalenseite ist zentrisch gebaut, mit radialer oder konzentrischer Anordnung der Wandskulpturen. Die überwiegende Mehrzahl der hierher gehörigen Arten lebt im Meere und beteiligt sich in hervorragendem Maße an der Zusammensetzung des Planktons[314]. Die Planktondiatomeen sind mit besonderen Schwimm- und Schwebeeinrichtungen, oft mit hornförmigen Fortsätzen oder Membranflügeln ausgestattet (Fig. 321 u. 322).
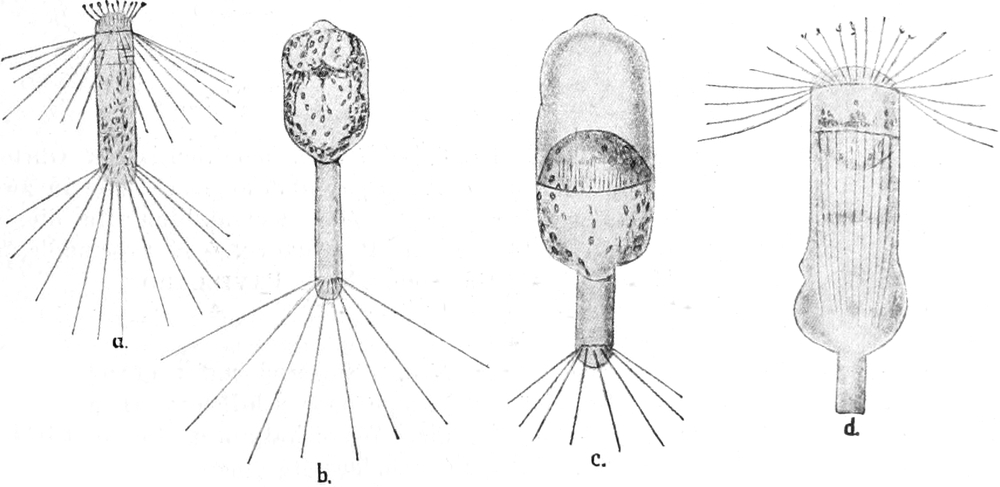
Fig. 322. Corethron Valdiviae. Antarktisches Plankton. a Zelle mit Schwebeborsten und Fangarmen, b Auxosporenbildung, Protoplast nach Abwerfen einer Schale aus der anderen hervortretend und zu etwa vierfachem Durchmesser herangewachsen, vom Perizonium umgeben, c Protoplast innerhalb des Perizoniums kontrahiert und die neue obere Schale ausbildend, d Perizonium oben aufgelöst. Die Auxospore bildet die untere Schale und tritt aus dem Perizonium hervor. Nach G. KARSTEN.
Die Auxosporenbildung der Centricae vollzieht sich als reiner Wachstumsvorgang in der Weise, daß der sich von den Schalen befreiende Plasmakörper einer Zelle zu einer vergrößerten Zelle heranwächst, die zunächst von einer schwach verkieselten Hülle (Perizonium) umgeben, in dieser die beiden neuen Schalen nacheinander ausscheidet (Fig. 322, 323 B).
Den Pennaten gegenüber zeichnen sich die Centricae durch bewegliche, mit Zilien versehenen Gameten aus. Die Bildung dieser bisher als Mikrosporen bezeichneten Sexualzellen wurde zuerst von BERGON bei Biddulphia mobiliensis (Fig. 323 A–D) untersucht. Hier teilt sich die Zelle zunächst in zwei sich gegeneinander abrundende Gametangien, deren Inhalt durch wiederholte Zweiteilungen in viele (32) Gameten zerlegt wird. Diese sind mit zwei gleich langen Geißeln versehen und schlüpfen als nackte Schwärmzellen aus den Behältern aus (Fig. 323 C–E). KARSTEN beobachtete an konserviertem Material von Corethron Valdiviae, daß die Mikrosporen paarweise zu Zygoten kopulieren, die heranwachsen und sich in je zwei Tochterzellen teilen. Jede Tochterzelle hat erst zwei Kerne, von denen einer später verschwindet; sie wächst allmählich zu einer fertigen Corethronzelle heran. Diese Vorgänge erinnern an das für Closterium zu schildernde Verhalten der Desmidiaceen. Auch bei einigen anderen Gattungen sind solche zweiwimperigen Gameten, und zwar von zweierlei Form, größere chromatophorenführende und etwas kleinere farblose, beobachtet worden (Fig. 323 E). Ihre Kopulation wurde in neuester Zeit von P. SCHMIDT an lebendem Material von Melosira festgestellt[317]. Die Geißeln der Gameten deuten auf phylogenetische Beziehungen der Diatomeen zu den Flagellaten, unter denen in erster Linie die Chrysomonadinen als Ausgangsgruppe in Betracht zu ziehen sind.
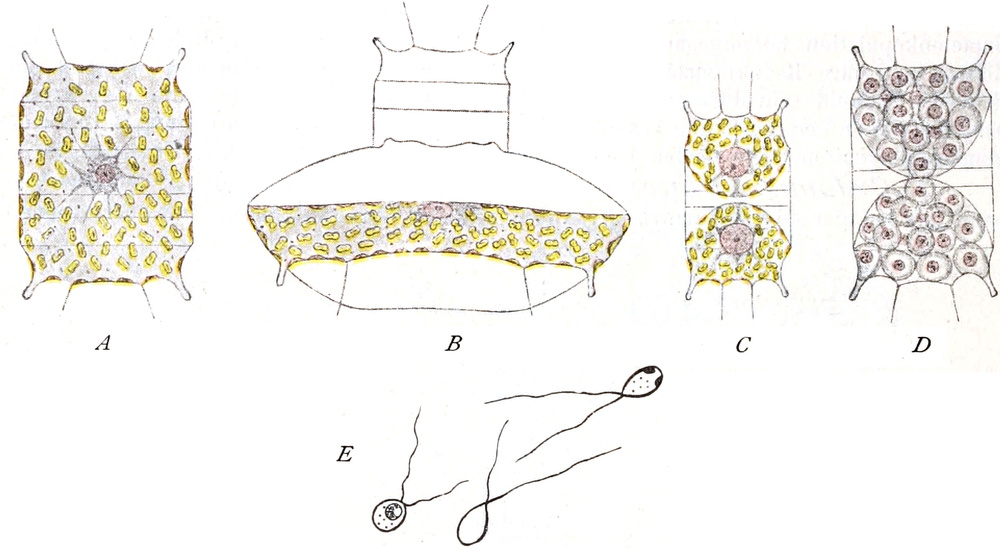
Fig. 323. A-D Biddulphia mobiliensis. A Gürtelbandansicht. B Auxosporenbildung. C Zelle in zwei Gametangien geteilt. D Gametenbildung in diesen. Vergr. 228. Nach P. BERGON. E Coscinodiscus, Gameten. Nach PAVILLARD.
2. Ordnung. Diatomeae pennatae. Sie sind meist grundbewohnende Kieselalgen. Die meist langelliptische oder stabförmige oder schiffchenförmige oder auch keilförmige Schalenseite zeigt fiedrige Anordnung ihrer Wandskulpturen (Fig. 320, 324, 325). Bei manchen Pennaten (Fig. 79) verläuft über die Schalenseite eine von zwei Endknoten ausgehende und in der Mitte zu einem Mittelknoten anschwellende Längsleiste oder Raphe, in welcher schraubig verlaufende Längsspalten die Zellwand durchsetzen. Die Formen mit Raphe zeichnen sich durch eine eigentümliche, ruckweise erfolgende Fortbewegung aus, deren Zustandekommen auf das in den Spalten befindliche und aus ihnen hervortretende strömende Plasma zurückgeführt wird. Die Bewegungen dieser Diatomeen werden durch äußere Reize veranlaßt.
Die Bildung der Auxosporen vollzieht sich in mannigfaltiger Weise. Wir gehen aus von dem Verhalten von Navicula, Pleurosigma u. a., auf das sich die anderen Typen zurückführen lassen; zwei Zellen legen sich hier nebeneinander und scheiden eine Gallerthülle aus. Ihre Kerne erfahren eine mit Chromosomenreduktion verbundene Tetradenteilung in je vier Kerne, nämlich zwei Großkerne und zwei Kleinkerne. Dann teilt sich jede Zelle in zwei Gameten, von denen ein jeder einen Großkern und einen Kleinkern mitbekommt. Die aus den Schalen hervortretenden Gameten kopulieren paarweise zu anfangs vierkernigen Zygoten; in diesen verschmelzen die Großkerne, während die Kleinkerne schwinden. Jede Zygote wächst innerhalb einer dünnen Hülle (Perizonium) zu einer mehrmals größeren Auxospore heran, die schließlich ihre beiden neuen Schalen ausbildet und die Reihe der vegetativen Zweiteilungen beginnt (Fig. 324).
Bei Surirella und Cocconeïs (Fig. 325) teilen sich die kopulierenden Zellen nicht in zwei Tochterzellen, sondern verschmelzen direkt miteinander; aber die Zellkerne erfahren noch Teilungen, und zwar teilt sich bei ersterer Gattung der Kern einer jeden Zelle zweimal, so daß ein großer Sexualkern und drei Kleinkerne entstehen, bei letzterer Gattung aber nur einmal in einen Großkern und einen Kleinkern. Die Großkerne verschmelzen, die Kleinkerne gehen zugrunde.
Bei Achnanthes subsessilis teilt sich der Inhalt einer Zelle in zwei austretende einkernige Tochterzellen, die sich alsdann zu einer Auxospore vereinigen.
Bei manchen Pennaten tritt die Sexualität zurück, und die Auxosporen entstehen parthenogenetisch. Bei Synedra teilt sich eine Mutterzelle in zwei zu Auxosporen heranwachsende Tochterzellen, deren Kerne zwar noch eine zweite Teilung ausführen, aber wieder verschmelzen; ebenso verhält sich Rhabdonema arcuatum, nur ist die zweite Kernteilung nicht mehr nachzuweisen.
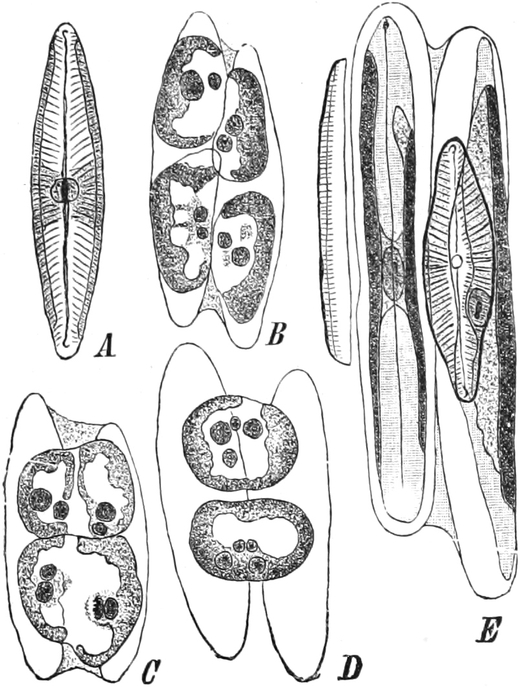
Fig. 324. Auxosporenbildung von Navicula viridula. A Zelle von der Schalenseite. B Zwei Zellen in je zwei Tochterzellen mit zwei Kernen geteilt. C, D Kopulation der Tochterzellen zu zwei anfangs vierkernigen Auxosporen. E Die beiden herangewachsenen Auxosporen. Vergr. 500. Nach G. KARSTEN.
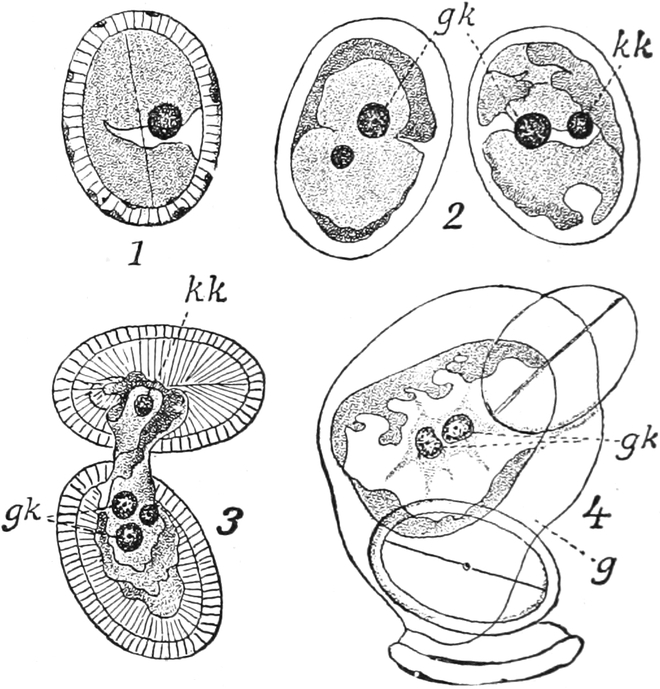
Fig. 325. Cocconeïs Placentula. 1 Vegetative Einzelzelle, 2 Zellenpaar vor der Kopulation, 3 und 4 in Kopulation. gk Großkern, kk Kleinkern, g Gallerte. Nach G. KARSTEN, aus OLTMANNS, Algen.
Rhabdonema adriaticum geht noch einen Schritt weiter; es stößt einen der beiden Tochterkerne aus dem Plasmakörper aus und entwickelt aus der ganzen Mutterzelle nur eine Auxospore.
Viele Pennaten siedeln sich mit Vorliebe an Stellen an, wo verwesende Substanzen reichlich vorhanden sind. Solche Arten können zu saprophytischer Lebensweise übergehen. Ihre Chromatophoren erleiden dabei unter Umständen eine bedeutende Verkleinerung und eine Entfärbung. Für einige marine Nitzschia-Arten ist sogar ausschließliche Ernährung aus organischen Substanzen und vollständiges Schwinden der Chromatophoren und Farbstoffe nachgewiesen[318].
Navicula ostrearia, eine im Mittelmeer vereinzelt auftretende, in den Austernparks der französischen Küsten aber sehr verbreitete und den Austern als Nahrung dienende Diatomee, zeichnet sich durch einen im Plasma enthaltenen himmelblauen Farbstoff, Marennin, aus. Das Marennin bewirkt Grünfärbung der Austern, in denen es sich unter Änderung seiner Farbe ablagert. Bei Neapel kommt sie auf Padina (S. 365) vor und verleiht ihr grüne Färbung[319].
Wegen ihrer außerordentlich feinen Membranskulptur dienen gewisse pennate Diatomeen als Testobjekte zur Prüfung von Mikroskopobjektiven, so namentlich Pleurosigma angulatum.
Fossile Diatomeen sind bis in den oberen Lias hinab nachgewiesen worden, in besonders reicher Fülle im Tertiär, wo ihre Schalen vielfach in größeren Massen abgelagert wurden, als Hauptbestandteil der Kieselgur (Bergmehl, Diatomeenerde), die zur Dynamitfabrikation Verwendung findet. Die tertiären Arten sind zum Teil mit jetzt noch lebenden identisch oder gehören meist denselben Gattungen an.
Die Konjugaten bilden eine formenreiche Gruppe von einzelligen oder von unverzweigt fadenförmigen, im Süßwasser lebenden grünen Algen, die sich von den Chlorophyceen scharf unterscheiden. Ihre Zellen vermehren sich nur durch Zweiteilung, sind einkernig und haben im Gegensatz zu den Diatomeen eine kieselfreie Membran sowie große, verwickelt gebaute grüne Chloroplasten. Ungeschlechtliche Vermehrung durch Schwärmsporen fehlt ihnen ebenso wie den Diatomeen, mit denen sie auch in ihrer sexuellen Fortpflanzung zum Teil übereinstimmen. Diese besteht in der Kopulation oder Konjugation zweier gleichgestalteter, geißelloser Gameten zu einer Zygospore oder Zygote.
Die Konjugaten und Diatomeen sind daher auch zu einer nunmehr als unnatürlich zu betrachtenden Gruppe der Zygophyceen zusammengefaßt und in Rücksicht auf den Mangel von Zilien an den Gameten auch als Acontae, Geißellose, bezeichnet worden. Letztere Bezeichnung trifft indessen für gewisse Diatomeen, wie wir sahen, nicht mehr zu. Die Reduktionsteilung erfolgt bei den Konjugaten nach der Kopulation in den keimenden Zygoten, bei den Pennaten dagegen bei Bildung der Gameten. Beide Gruppen haben offenbar getrennt voneinander ihren Ausgang aus Flagellaten genommen.
1. Die Mesotaeniaceae umfassen als einfachste einzellige Konjugaten nur wenige Gattungen; sie besitzen eine einfache, nicht wie bei den Desmidiaceen aus zwei Hälften bestehende Membran ihrer kurzzylindrischen, in Gallerte an feuchten Orten lebenden Zellen. Die Kopulation zeigt Verschiedenheiten. Bei Cylindrocystis (Fig. 326) verschmelzen die Protoplasten von zwei Zellen als Gameten zu einer Zygote, beide Kerne vereinigen sich, während die vier Chloroplasten erhalten bleiben. Vor der Keimung teilt sich die Zygote schrittweise in vier Keimzellen, die dann aus ihr heraustreten. Im ersten Teilungsschritt vollzieht sich die Reduktion der Chromosomen. Bei Spirotaenia dagegen teilen sich erst die Protoplasten der beiden kopulierenden Zellen in zwei Tochterzellen, die dann paarweise zu Zygoten verschmelzen. Auch sollen hier aus diesen nur zwei Keimlinge hervorgehen, indem die beiden anderen unterdrückt werden.
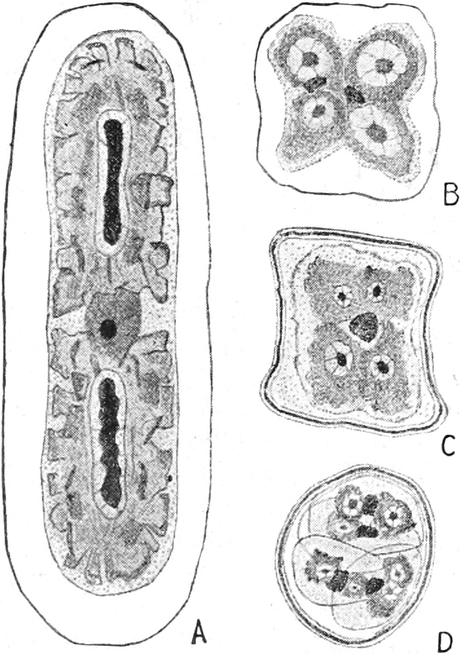
Fig. 326. A Cylindrocystis Brebissonii. Der Zellkern in der Mitte zwischen zwei großen viellappigen Chloroplasten mit langen Pyrenoiden. B Zygote vor, C nach der Verschmelzung der Kerne, D Zygote vor der Keimung mit vier Tochterzellen. Nach KAUFFMANN.
2. Die Desmidiaceen sind ebenfalls einzellige oder in Zellketten erscheinende Konjugaten; sie gehören zu den zierlichsten Algen der Torfmoore und Sümpfe und weisen ebenso wie die Diatomeen eine ungemeine Mannigfaltigkeit der Gestalt auf. Ihre Zellen bestehen aus zwei symmetrischen Hälften, die meist durch eine Einschnürung begrenzt sind. Jede Hälfte enthält einen großen Chloroplasten mit einigen Pyrenoiden oder Stärkeherden; in der Mitte der Zelle ist der Kern gelegen. Die Gesamtform ist sehr verschieden, bald abgerundet eckig (z. B. Cosmarium, Fig. 327 A, B), bald sternförmig (Micrasterias, Fig. 327 D). Häufig ist die Membran, die wie bei den Diatomeen aus zwei Hälften besteht, mit stachel- oder warzenartigen Verdickungen versehen und meist von Poren, die der Gallertausscheidung dienen, durchsetzt. Einige Gattungen zeigen keine Einschnürungen zwischen den beiden Hälften der Zelle, so z. B. Closterium moniliferum (Fig. 328 F)[321], dessen zwei Chromatophoren die Gestalt von kegelförmigen, mit Rippen besetzten Körpern haben, und das an den Zellenden je eine Vakuole mit winzigen, in Bewegung befindlichen Gipskristallen aufweist. Manche Desmidieen vollziehen phototaktische Bewegungen; sie stoßen an ihren Enden durch Poren der Membran Schleimfäden aus, mittels deren sie sich fortschieben und in die Richtung der einfallenden Lichtstrahlen stellen können.
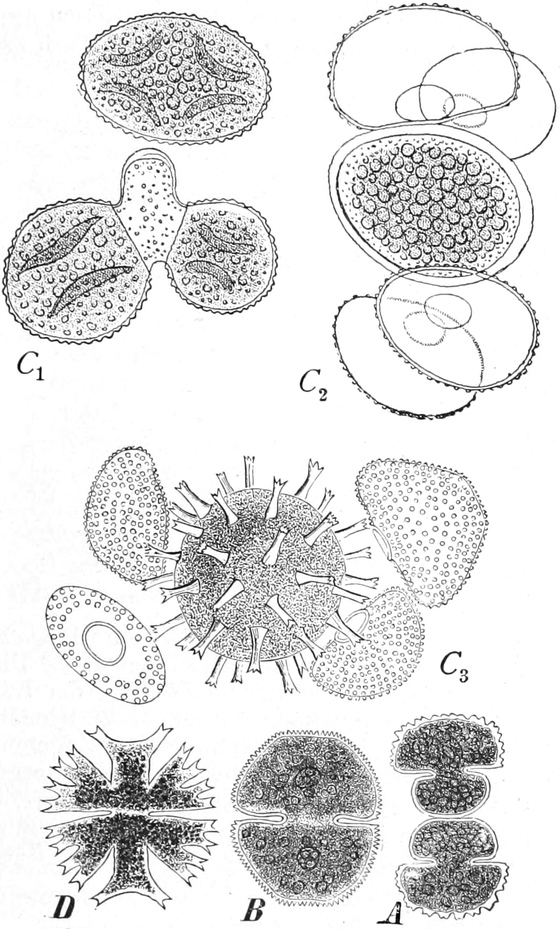
Fig. 327. A Cosmarium coelatum in Teilung. B, C Cosmarium Botrytis. C1 Zwei gekreuzt stehende Zellen im Beginn der Kopulation, die untere Zelle zeigt den Kopulationskanal. C2 Gameten zur jungen Zygote verschmolzen. C3 Fertige Zygote. D Micrasterias Crux melitensis. Nach RALFS, C2 und C3 nach DE BARY.
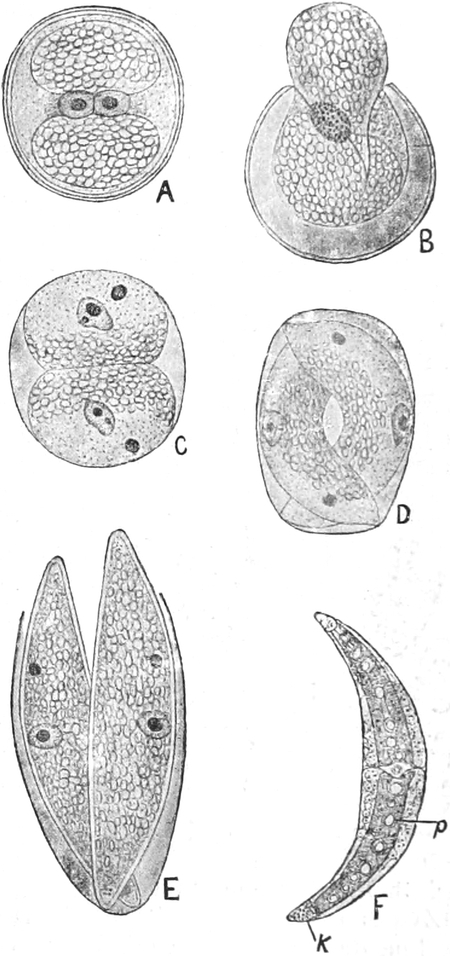
Fig. 328. Closterium. A Zygote vor der Keimung mit den beiden noch nicht verschmolzenen Gametenkernen. B Zygote in Keimung, Kerne zu einem vereinigt. C Teilung in zwei Zellen, jede mit einem Großkern und einem Kleinkern. D Weiterentwicklung der Keimlinge. E Heraustreten derselben aus der Membran. F Fertiges Stadium von Closterium moniliferum. A–E nach KLEBAHN.
Die Vermehrung geschieht durch Zweiteilung, die nach der Kernteilung durch eine in der Einschnürung der Zelle auftretende und dann sich spaltende Querwand vollzogen wird. Die Tochterzellen bilden sodann neue Zellhälften aus, indem sie sich nach der Teilungsfläche zu ausstülpen (Fig. 327 A).
Zur Kopulation legen sich zwei Zellen nebeneinander und umgeben sich mit Gallerte; die Zellwand bricht in der Einschnürung auf, die Protoplasten treten in die sich vorwölbenden, bald verschleimenden Kopulationskanäle und vereinigen sich zur Zygospore, deren Wandung häufig durch Stachelbildungen ausgezeichnet ist (Fig. 327 C). Neben oder an den reifen Sporen liegen die vier Membranhälften. Bei einigen Desmidieen werden die kopulierenden Zellen erst in je zwei Tochterzellen geteilt, die dann paarweise sich vereinigen.
Die in die Zygoten eingetretenen beiden Gametenkerne verschmelzen erst bei beginnender Keimung zu einem einzigen, der sich darauf nacheinander in vier Kerne, zwei große und zwei kleine, voraussichtlich unter Reduktion der Chromosomenzahl, teilt. Es werden aber nur zwei Keimzellen gebildet, von denen jede zwei ungleich große Kerne mitbekommt, deren kleinerer später schwindet (Fig. 328). Die zweizellige Keimung erscheint so als Reduktion der vierzelligen von Cylindrocystis. Die vier Chromatophoren der Zygote gehen zur Hälfte zugrunde, die beiden übrigbleibenden teilen sich vor der Keimung in je zwei.
3. Unter den fadenförmigen Konjugaten, den Zygnemaceen[322] ist am bekanntesten die Gattung Spirogyra, deren zahlreiche Arten als frei schwimmende, fädige grüne Watten im Frühjahr in ruhigen Gewässern häufig auftreten. Die aus längeren oder kürzeren Zellen bestehenden Fäden wachsen in die Länge unter Teilung und Streckung aller Zellen. Auch ist der Fadenverband kein inniger, denn die Zellen können sich unter Umständen leicht aus ihm lösen. Jede Zelle besitzt einen Kern und einen oder mehrere wandständige, bandförmige, schraubige Chloroplasten (Fig. 329 C und 17). Die Zellwand ist glatt und porenlos. Bei der Gattung Zygnema sind zwei sternförmige Chloroplasten vorhanden, bei Mesocarpus ein axiler bandförmiger. Die Fäden können sich in einer noch unbekannten Weise fortbewegen.
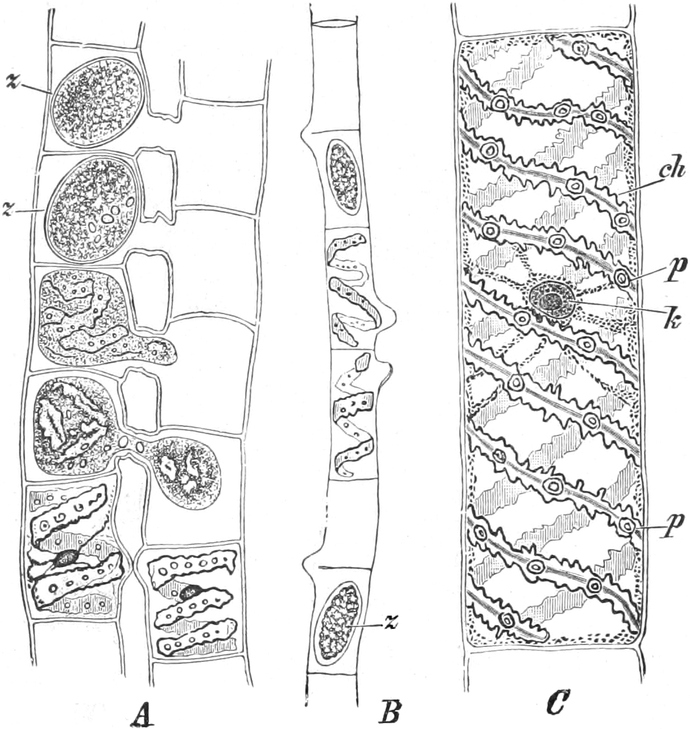
Fig. 329. A Kopulation von Spirogyra quinina. z Zygosporen. Vergr. 240. B Desgleichen von Sp. longata. Vergr. 150. C Zelle von Sp. jugalis, k Kern, ch Chromatophor, p Pyrenoide oder Amylumherde. Vergr. 256.
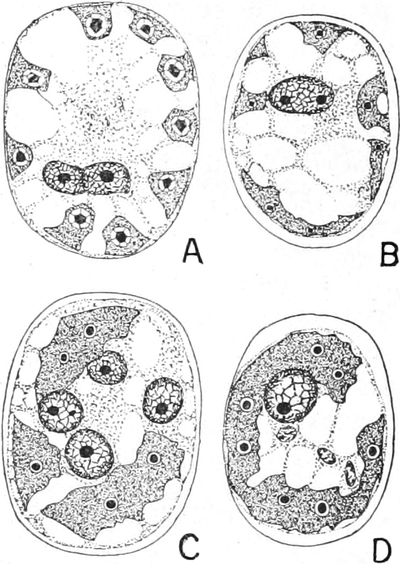
Fig. 330. Spirogyra longata. Junge und alte Zygoten. A Die beiden Sexualkerne vor der Kopulation, B nach der Verschmelzung, C Teilung des Zygotenkerns in vier haploide Kerne. D Die drei Kleinkerne in Zerfall. Chlorophyllbänder wandständig, durchschnitten gezeichnet. Nach TRÖNDLE.
Die Kopulation der Gameten vollzieht sich innerhalb der Membranen der Zellen, die durch Kopulationskanäle miteinander in offene Verbindung treten (Fig. 329). Der Protoplast der einen Zelle wandert dann durch den Kanal zu dem anderen hinüber. Ersterer kann als männlich, letzterer als weiblich bezeichnet werden. Plasma und Kerne verschmelzen miteinander, nicht aber die Chlorophyllkörper, von denen die in der männlichen Zelle befindlichen zugrunde gehen. So entsteht eine sich abrundende mit dicker dreischichtiger Membran umkleidete, dicht mit Fett und rotbraunen Schleimkugeln erfüllte Zygospore. Bei den meisten Spirogyren erfolgt die Kopulation von zwei, zuweilen auch von mehreren Fäden leiterförmig (Fig. 329 A). Zuerst legen sich diese dicht nebeneinander; dann wölben sich die gegenüberstehenden Zellen aufeinander zu und werden an den Berührungsstellen fest verbunden. Hier strecken sich die Wände zu kurzen Kanälen, wodurch die Fäden etwas voneinander geschoben werden. Schließlich wird die trennende Wand im Kanal aufgelöst.
Sind, wie es meist der Fall ist, die Fäden getrennt geschlechtig, so liegen die Zygosporen sämtlich im weiblichen Faden. Es gibt aber auch gemischt geschlechtige Arten, bei denen sie dann teils im einen, teils im anderen Faden liegen. Bei diesen letzteren Arten kann auch seitliche Kopulation von aufeinanderfolgenden geschlechtlich verschieden differenzierten Gameten eintreten (Fig. 329 B). Nach HEMLEBEN findet diese geschlechtliche Differenzierung in der Regel vor der letzten Zweiteilung der Fadenzellen statt und dem entspricht auch die Lagerung der Zygosporen.
Es gibt übrigens auch Gattungen, bei denen die Zygote mitten in den Kopulationskanal gelagert wird.
Der Kopulationskern der jungen Zygospore erfährt eine mit Chromosomenreduktion verbundene Tetradenteilung. Von den vier Kernen wird einer zum Kern des Keimlings, die drei übrigen werden zu Kleinkernen und gehen zugrunde (Fig. 330). Von den Chloroplasten der beiden Gameten werden die des übertretenden aufgelöst. So entsteht nur ein Keimling, der schlauchförmig auswächst und durch Zellteilung den Faden bildet.
Die Heterocontae umfassen eine Anzahl Gattungen grüner Algen, die zu den Chlorophyceen gerechnet wurden, besser aber als selbständiger, aus Chrysomonadinen hervorgegangener Formenkreis zu betrachten sind.
Sie zeichnen sich aus durch gelbgrüne Färbung ihrer plattenförmigen Chromatophoren, die außer Chlorophyllgrün einen gelben, mit Säuren sich blau färbenden Farbstoff enthalten und als Assimilationsprodukt nie Stärke, sondern fettes Öl bilden, ferner fast stets durch zwei ungleich lange, etwas seitlich eingefügte Zilien ihrer Schwärmzellen, endlich in vielen Fällen durch Zusammensetzung ihrer pektinhaltigen und meist verkieselten Zellmembran aus zwei ineinander geschachtelten Teilen. Teils sind die Heteroconten einzellig, teils leben ihre Zellen in gallertigen Zellkolonien oder auf Gallertstielen, teils stellen sie Zellfäden vor.
Die Vermehrung erfolgt durch Schwärmsporen, bei gewissen Gattungen aber auch an deren Stelle durch endogene Aplanosporen; auch werden endogene Zysten gebildet, die wie die zuletzt genannten Sporen meist mit zweischaligen Kieselmembranen versehen sind. Bei einigen Gattungen sind außer Schwärmsporen auch diesen ähnliche, paarweise kopulierende Gameten beobachtet worden.
Die Heteroconten beteiligen sich mit mehreren einzelligen Gattungen (Meringosphaera, Halosphaera) an der Zusammensetzung des marinen Planktons.
An den Beginn der Klasse stellen wir flagellatenartige Formen, wie die im Süßwasser lebende Chloramoeba heteromorpha (Fig. 331), deren nackte, amöboid veränderliche Zellen einen Zellkern, 2–6 gelbgrüne Chloroplasten und am Vorderende über einer Vakuole zwei sehr ungleich lange Geißeln besitzen. Chloramoeba gehört zu den niederen grünen Organismen, die bei Kultur im Dunkeln in Nährlösung farblos werden und zu unselbständiger Ernährung übergehen. Ruhestadien werden von derbwandigen Dauerzellen gebildet.
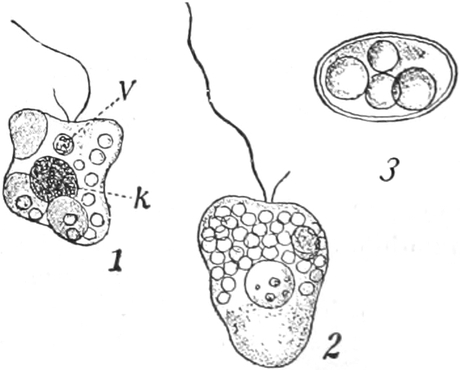
Fig. 331. Chloramoeba heteromorpha. 1 Grüne Form. 2 Farblose Form. v Vakuole, k Kern. 3 Dauerzelle. Nach BOHLIN, aus OLTMANNS, Algen.
Unter den höher stehenden Heteroconten ist besonders die im Süßwasser sehr verbreitete Gattung Conferva (Tribonema) (Fig. 332) zu nennen, deren Arten unverzweigte Zellfäden vorstellen mit eigenartig gebauter Membran, die aus zwei in der Mitte der Zelle durch einen schräg-ringförmigen Spalt getrennten Stücken besteht und bei der Teilung durch Einschiebung eines neuen, im Längsschnitt H-förmigen Membranstückes verlängert wird. Die Zoosporen entstehen zu 1 oder 2 aus den Fadenzellen. Außer Zoosporen werden auch, unter Zerfall der Fäden, geißellose derbwandige Aplanosporen erzeugt.
Die Mehrzahl der Heteroconten besitzt einkernige, nur gelegentlich zweikernige Zellen. Doch gehören auch Gattungen mit mehrkernigen Zellen wie Ophiocytium und Sciadium in diese Klasse.
Zu den Heteroconten stellen wir mit Vorbehalt auch Botrydium granulatum (Fig. 333), eine auf feuchtem Lehmboden sehr verbreitete Alge, deren einzelliger, aber vielkerniger Thallus die Form von einer etwa 2 mm großen, birnförmigen, grünen, unterwärts mit farblosem verzweigtem Rhizoïd festgeankerten Blase aufweist. Die Zoosporen werden in großer Zahl erzeugt, treten aus einem Loch am Scheitel aus, besitzen zwei Chloroplasten, eine endständige Geißel, umgeben sich nach dem Schwärmen mit Membran und keimen zu neuen Blasen heran. Geschlechtliche Fortpflanzung ist nicht bekannt[289].
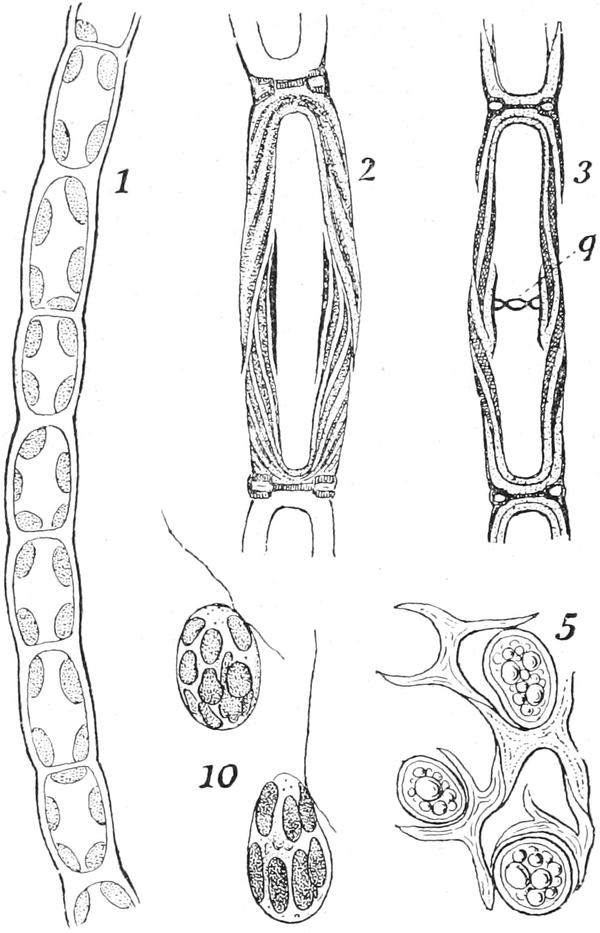
Fig. 332. Conferva bombycina. 1 Faden, 2, 3 Zellwandbildung, q Querwand, 5 Aplanosporenbildung unter Zerfall der Fäden, 10 Zoosporen mit ungleich langen Geißeln. Nach GAY (1, 5), BOHLIN (2, 3), LUTHER (10). Aus OLTMANNS, Algen.
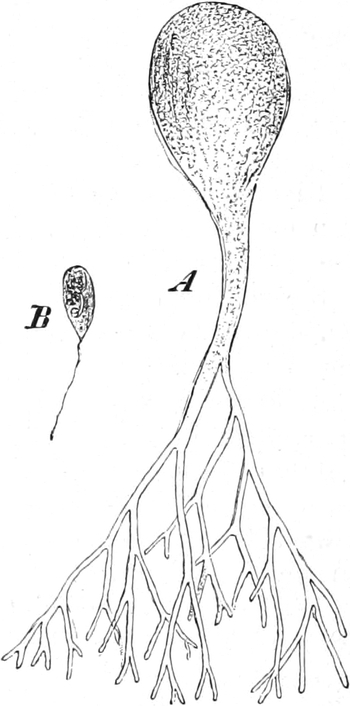
Fig. 333. Botrydium granulatum. A Vergr. 28. B Eine Schwärmspore. Vergr. 540. Nach STRASBURGER.
Nach Ausscheidung der ebenfalls grünen Konjugaten und Heteroconten verbleiben die Chlorophyceen als eine natürliche, in mehreren Reihen aufsteigende Gruppe von Algen, von denen der größere Teil in Süßwasser oder an feuchten Orten, manche größere Arten aber auch an den Meeresküsten leben, während sie am marinen Plankton keinen Anteil haben. Ihre mit Membran umhüllten Zellen zeichnen sich aus durch rein grün gefärbte, fast stets Stärke bildende und häufig Pyrenoide führende Chloroplasten. Ihre ungeschlechtlichen Schwärmsporen haben birnförmige Gestalt und besitzen bei den typischen Vertretern zwei oder vier gleich lange Geißeln (daher auch die Bezeichnung Isocontae für die Gruppe), und im unteren Teil einen gebogenen oder auch becherförmigen Chloroplasten. Bei einigen Gattungen treten an Stelle der Schwärmsporen unbewegliche Aplanosporen auf; bei gewissen höher stehenden Gattungen (Oedogonium, Vaucheria) sind die Schwärmsporen weniger einfach gebaut, lassen sich aber auf die ursprünglicheren Formen zurückführen.
Die Schwärmsporen gelangen durch phototaktische Bewegungen an Orte, die ihnen für ihre Keimung die günstigsten Lichtbedingungen bieten (vgl. S. 291).
Die sexuelle Fortpflanzung geschieht meist durch Kopulation von Gameten, die den Zoosporen ähnlich sind. Bei den Endgliedern aller Gruppen mit Ausnahme der Protococcales hat sich aber an Stelle dieser Isogamie bereits Oogamie herausgebildet. Die Reduktionsteilung erfolgt, soweit untersucht, bei der Keimung der Zygoten.
Von den fünf Ordnungen der Chlorophyceen schließen sich die Volvocales am nächsten an die Flagellaten an, von denen sie sich aber durch den Besitz von Zellmembranen unterscheiden; sie umfassen ebenso wie auch die Protococcales einzellige oder Zellkolonien bildende Formen. Die Ulotrichales und Siphonocladiales stellen Zellfäden vor, die bei ersteren aus einkernigen, bei letzteren aus großen vielkernigen Zellen bestehen und in den einfachsten Fällen unverzweigt, bei höher stehenden Formen oft vielfach verzweigt sind. Die Siphonales endlich haben einen aus einer einzigen schlauchförmigen, vielkernigen Zelle aufgebauten Thallus.
Die Grünalgen stellen sicher eine sehr alte Gruppe niederer Pflanzen vor. Mit Sicherheit sind aber nur die durch Kalkabscheidungen widerstandsfähigen Thalli mariner Siphonocladiales bis in das Silur abwärts nachgewiesen worden. Diese Kalkalgen spielten namentlich in der Trias eine bedeutende Rolle und erreichten dort eine große Formenfülle.
1. Ordnung. Volvocales. Sie zeichnen sich dadurch aus, daß die Zellen, die einen Kern und einen Chloroplasten enthalten, auch während ihres vegetativen Zustandes die Geißeln behalten, also ständig beweglich bleiben. Darin verhalten sie sich wie Flagellaten.
Fig. 334. A, B Haematococcus pluvialis. A Schwärmende Zelle. B Bildung der Schwärmsporen. Vergr. 360. C-G Haematococcus Bütschlii. C Gametenbildung. Vergr. 400. D Gamet. E Kopulation zweier Gameten. F, G Zygoten. Vergr. 800. C-G nach BLOCHMANN.
Fig. 335. Chlamydomonas angulosa, nach DILL. g Geißeln, v Vakuole, k Kern, chr Chromatophoren, py Pyrenoid, a Augenfleck. 2 Polytoma uvella, nach DANGEARD. Aus OLTMANNS, Algen.
Chlamydomonas (Fig. 335) und Haematococcus (Fig. 334) gehören zu den freischwimmenden einzelligen Formen[325]. Bei ersterer Gattung liegt die Membran dicht dem Protoplasten an, der vorn zwei Geißeln und einen roten Augenfleck besitzt; bei letzterer dagegen ist der Protoplast bis auf einige Fortsätze von der Membran durch eine Gallertschicht getrennt. Haematococcus pluvialis tritt häufig in Regenpfützen auf und zeichnet sich ebenso wie die auf Firnfeldern den „roten Schnee“ verursachende Chlamydomonas nivalis durch einen roten Farbstoff, Hämatochrom (= Karotin), in seinen Zellen aus. Die Vermehrung geschieht ungeschlechtlich durch Schwärmsporen, die zu 2–8–16 in einer Mutterzelle gebildet und durch Zerreißen der Membran frei werden, und außerdem geschlechtlich durch Kopulation kleiner, zweiwimperiger, gleichartiger Gameten, die in größerer Menge (64 oder noch mehr) in der Mutterzelle entstehen und paarweise mit den Vorderenden zu ruhenden Zygoten sich vereinigen. Bei Chlamydomonas coccifera ist nach GOROSCHANKIN[326] im Gegensatz zu den übrigen Arten eine weitgehende Differenzierung der Gameten eingetreten. Einzelne Zellen werden zu großen, zilienlosen weiblichen Gameten oder Eizellen, andere teilen sich und liefern je 16 kleine, zweizilige männliche Gameten. Der Übergang zur Oogamie vollzieht sich hier also schon bei einzelligen Algen.
Polytoma uvella, die wie Chlamydomonas gebaut ist, verdient Erwähnung, weil sie eine farblose, saprophytisch sich ernährende Form darstellt (Fig. 335, 2).
Mehrere Chlamydomonaden verlieren unter gewissen Bedingungen ihre Geißeln. Die Zellen teilen sich weiter, werden aber durch die gallertig aufquellenden Zellwände noch in Kolonien zusammengehalten (sog. Palmella-Stadium). Unter günstigen Bedingungen werden die Zellen wieder beweglich.
Die Gattungen Pandorina, Eudorina, Volvox u. a. vereinigen ihre zweiwimperigen Zellen zu freischwimmenden Kolonien oder Cönobien. Volvox (Fig. 336) als höchststehende Form zeigt hohlkugelige Kolonien, deren zahlreiche Protoplasten durch feine Fortsätze noch in Verbindung bleiben, so daß eine solche Kolonie bereite als ein Individuum oder auch als eine einfache Form eines Plasmodiums aufgefaßt werden kann. Bei Volvox sind die Geschlechtszellen in Eier und Spermatozoiden differenziert. Die Eizellen entstehen durch Vergrößerung einzelner Koloniezellen, sind groß, grün, unbeweglich und von Gallerte umgeben, während die viel kleineren, langgestreckten, nackten hellgrünen Spermien unter ihrem schmalen farblosen Vorderende seitlich zwei lange Zilien tragen und durch Teilung von Koloniezellen in zahlreiche Tochterzellen entstehen. Nach Kopulation der Eizelle mit einem Spermium wird die Eizelle zu einer derbwandigen, ruhenden Oospore, in der sich bei der Keimung die Reduktionsteilung des Zygotenkerns abspielt[327]. Volvox vermehrt sich vegetativ durch Teilung einzelner Koloniezellen zu neuen Tochterkolonien, ein Vorgang, welcher der Schwärmsporenbildung der einfacheren Gattungen entspricht. Außer Volvox zeichnet sich auch noch Eudorina durch Oogamie aus.
Fig. 336. Volvox globator. A Kolonie mit Eizellen und Spermiengruppen in verschiedenen Entwicklungsstadien. Vergr. 165. B Spermienbündel, aus einer Zelle durch Teilung entstanden. Vergr. 530. C Spermien. Vergr. 530. D Eizelle, in der Gallertmembran von Spermien umschwärmt. Vergr. 265. Nach F. COHN.
2. Ordnung. Protococcales. Einzellige oder in Zellkolonien verschiedener Form lebende grüne Algen, deren vegetative Zellen aber keine Zilien tragen, also unbeweglich sind. Meist ist nur ein Kern und ein Chloroplast in der Zelle vorhanden. Die Vermehrung geschieht durch Zoosporen, an deren Stelle aber bei manchen Gattungen auch zilienlose Aplanosporen treten. Die geschlechtliche Fortpflanzung besteht in Kopulation gleichgestalteter Gameten; sie ist aber nur bei einigen Gattungen nachgewiesen und scheint bei den einfacheren Formen überhaupt noch nicht zur Ausprägung gekommen zu sein.
Zu den einfachsten Formen gehören die einzelligen Gattungen Chlorococcum und Chlorella[328], [329]. Erstere bildet kugelige Zellen, die in Süßwasser, aber auch auf feuchten Substraten vorkommen. Die Vermehrung geschieht ungeschlechtlich durch Teilung der Zellen in eine Anzahl von ausschlüpfenden Zoosporen (Fig. 337), an deren Stelle unter gewissen Umständen auch zilienlose Aplanosporen gebildet werden können. Chlorella vulgaris (Fig. 338) ist eine ungemein verbreitete Alge, deren kleine grüne Zellen häufig symbiotisch im Plasma von niederen Tieren, Infusorien, Hydra, Spongilla, Planarien leben und sich ausschließlich durch Teilung der Zellen in 2, 4 oder 8 austretende Aplanosporen vermehren, die sich mit Membran umgeben und heranwachsen.
Fig. 337. Chlorococcum (Chlorosphaera) limicola. 1 Vegetative Zelle und Zelle in acht Zoosporen geteilt. 2 Freie Zoosporen. 3 Dieselben nach Umhüllung mit Membran. Nach BEIJERINCK, aus OLTMANNS, Algen.
Fig. 338. Chlorella vulgaris. 1 Zelle. 2, 3 Teilung in vier Aplanosporen. 4, 5 Desgleichen in acht. Nach GRINTZESCO.
Fig. 339. A Scenedesmus acutus. B Desgleichen in Teilung. C Scenedesmus caudatus. Vergr. 1000. Nach SENN.
Fig. 340. Pediastrum granulatum. A Alte Zellfamilie, entleert bis auf die drei Zellen a; die Zelle b entläßt 16 Schwärmzellen. B Zellfamilie nach dem Austritt. C Zellfamilien 41⁄2 Stunden später. Vergr. 300. Nach AL. BRAUN.
An Chlorella schließen wir die im Süßwasser sehr verbreitete Gattung Scenedesmus (Fig. 339) an, welche Zellkolonien einfachster Art, meist aus je vier Zellen in einer Querreihe vorstellt. Die häufigste Art, S. acutus, hat spindelförmige Zellen, während S. caudatus an jeder Endzelle zwei lange, hornförmige Membranfortsätze besitzt. Jede Zelle teilt sich der Länge nach in vier zilienlose und sich mit Membran umgebende Tochterzellen, die nach Verlassen der alten Membran eine neue Kolonie bilden. Reicher zusammengesetzte Zellkolonien treffen wir bei Pediastrum (Fig. 340) an in Form von zierlichen, freischwimmenden Täfelchen. Die Bildung ungeschlechtlicher, mit zwei Zilien versehener Schwärmsporen findet in der Weise statt, daß der Inhalt einer Zelle sich in eine Anzahl (bei dem abgebildeten P. granulatum in 16) Schwärmsporen teilt, welche, von einer gemeinsamen Blase umgeben, durch einen Riß in der Wandung austreten, sich sodann in der Blase bewegen und schließlich zu einer neuen heranwachsenden Zellfamilie zusammenlegen. Neben der ungeschlechtlichen tritt bei Pediastrum auch geschlechtliche Fortpflanzung auf. Die Gameten sind den Schwärmsporen ähnlich, nur kleiner, und entstehen in den Zellen in größerer Zahl; sie schwimmen frei im Wasser und kopulieren paarweise zu Zygoten. Beide Gameten sind gleich gestaltet. Die Weiterentwicklung der Zygoten zu den Zellfamilien ist noch nicht ganz lückenlos bekannt.
Ähnlich ist auch der Entwicklungsgang des Wassernetzes, Hydrodictyon utriculatum[289], [330], einer der zierlichsten freischwimmenden Süßwasseralgen, deren zylindrische vielkernige Zellen zu einer Kolonie in Form eines sackförmigen, langgestreckten, vielmaschigen Netzes verbunden sind.
Hierher gehört auch Protosiphon botryoides, eine auf Schlammboden meist gemeinsam mit dem habituell ähnlichen Botrydium (S. 352) lebende Alge, deren blasenförmige bis 5 mm breite, nach unten in einen farblosen Wurzelschlauch sich verlängernde Zelle einen netzförmig durchbrochenen Chloroplasten und zahlreiche Kerne enthält und sich durch Sprossung und Teilung vermehrt. Fortpflanzung erfolgt durch Isogamie. Protosiphon zeigt, daß der Thallus schon bei den Protococcales siphonalen Charakter annehmen kann.
Die Protococcales leiten wir ebenso wie die Volvocales von Flagellaten ab. Im Gegensatz zu den Volvocales hat aber bei ihnen, wie auch weiterhin bei allen höherstehenden Algen, der unbewegliche zilienlose Zustand der Zellen die Oberhand gewonnen, so daß bei einigen Gattungen sogar auch die Sporen keine Geißeln mehr erzeugen, obwohl im allgemeinen gerade in den Keimzellen der Algen der Flagellatencharakter sich recht zähe erhält. Hand in Hand mit der Aufgabe der Beweglichkeit erfolgt dann bei den Arten mit ruhenden Einzelzellen eine fortschreitend reichere Ausgestaltung der äußeren Zellform.
3. Ordnung. Ulotrichales. Sie bezeichnen den einzelligen Grünalgen gegenüber einen Fortschritt in der äußeren Gliederung des Thallus, der stets mehrzellig erscheint und meist aus einfachen oder verzweigten Zellfäden besteht. Die Zellfäden sitzen entweder mit einer farblosen Fußzelle am Substrat unter Wasser fest (Fig. 342 A) oder schwimmen frei. Bei der im Meere lebenden Gattung Ulva (Ulva lactuca, Meersalat) besteht der Thallus aber aus großen blattartigen, grünen, zweischichtigen Zellflächen (Fig. 81, Keimpflanze), bei Enteromorpha ist er zylindrisch oder abgeflacht bandförmig (Fig. 341); in der Jugend auch hier zweischichtig, wird er später innen hohl, so daß die Wandschicht nur aus einer Zellage besteht. Die Ulotrichales leben im Süßwasser oder im Meere. Nur einige Formen (Chroolepideen) wachsen als Luftalgen an Felsen, Baumstämmen, in den Tropen auch auf Blättern. Hierzu gehört die auf Steinen in Gebirgen wachsende Trentepohlia (oder Chroolepus) Jolithus, deren Zellfäden infolge Hämatochromgehaltes rot erscheinen und einen veilchenartigen Geruch besitzen (Veilchenstein).
Die Zellen besitzen stets nur einen Zellkern und meist auch nur einen Chloroplasten. Die ungeschlechtliche Fortpflanzung vollzieht sich durch zilientragende Schwärmsporen, die geschlechtliche besteht entweder in Kopulation von Planogameten, oder die Geschlechtszellen sind in Eizellen und Spermien differenziert.
Fig. 341. Enteromorpha compressa. Häufige Grünalge der Nordseeküsten. 1⁄2 nat. Gr.
Ulothrix zonata[297] (Fig. 342 A), der typische Vertreter der Gruppe, ist eine der häufigsten Fadenalgen. Sie besteht aus unverzweigten, mit einer Rhizoïdzelle festsitzenden Fäden ohne Spitzenwachstum; ihre kurzen Zellen enthalten einen bandförmigen Chloroplasten. Die ungeschlechtliche Fortpflanzung geschieht durch vierzilige Schwärmsporen (Zoosporen) (C), die einzeln oder durch fortgesetzte Zweiteilung zu mehreren in einer Fadenzelle gebildet werden und durch ein seitlich entstehendes Loch aus der Zellmembran ausschlüpfen (B), umherschwärmen und dann zu neuen Fäden auswachsen. Die geschlechtlichen Schwärmzellen, Planogameten, bilden sich in gleicher Weise aus Fadenzellen oder Gametangien, aber in viel größerer Zahl (D, E); sie sind kleiner und besitzen nur zwei Zilien, außerdem einen roten Augenfleck und einen Chloroplasten, wie die Schwärmsporen; Ulothrix ist morphologisch isogam, physiologisch aber heterogam, denn Gameten, die aus ein und demselben Faden stammen, kopulieren nicht miteinander, sondern nur solche von getrennter Herkunft; sie verschmelzen dann paarweise zu Zygoten (F-H), welche die Zilien einziehen, sich abrunden und mit Membran umkleiden. Die Zygote stellt einen Ruhezustand dar, sie wird zu einem kleinen einzelligen Keimpflänzchen (J); ihr Inhalt teilt sich in mehrere Zellen, aus denen die neuen Ulothrixfäden wieder heranwachsen. Übrigens können sich die Planogameten unter Umständen auch parthenogenetisch ohne Kopulation direkt weiter entwickeln. Damit ist die Mannigfaltigkeit der Schwärmerbildung noch nicht erschöpft, denn die Fäden können außer den oben genannten Schwärmsporen mit vier Wimpern auch kleinere ungeschlechtliche, aber gametenähnliche Mikrozoosporen mit vier oder zwei Wimpern erzeugen, welche bei Temperaturen über 10° meist zugrunde gehen, bei solchen unter 10° nach einigen Tagen zur Ruhe kommen und dann langsam keimen. Die Alge ist insofern von Interesse, als bei ihr die sexuelle Differenzierung der Gameten noch in einem Anfangsstadium steht.
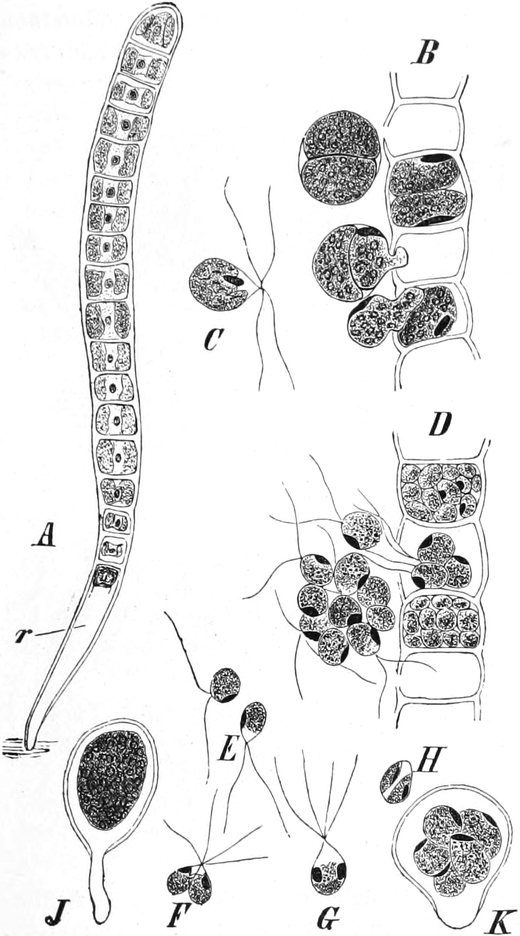
Fig. 342. Ulothrix zonata. A Junger Faden mit Rhizoïdzelle r. Vergr. 300. B Fadenstück mit ausschlüpfenden Schwärmsporen, zu zwei in jeder Zelle. C Einzelne Schwärmspore. D Gametenbildung und Entleerung eines Fadenstückes. E Gameten. F, G Kopulation der Gameten. H Zygote. J Zygote nach der Ruheperiode. K Zygote, deren Inhalt in mehrere Zellen sich geteilt hat. B-K Vergr. 482, nach DODEL.
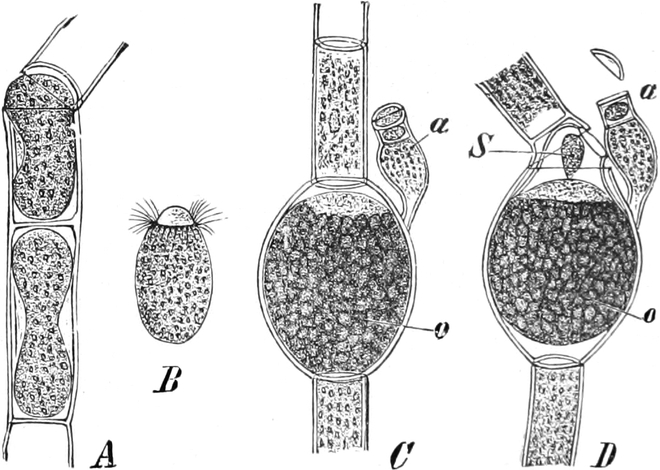
Fig. 343. A, B Oedogonium. A Schwärmsporen beim Ausschlüpfen. B Schwärmspore. C, D Oed. ciliatum. C Vor der Befruchtung. D Während der Befruchtung. o Oogonien, a Zwergmännchen, S Spermatozoid. Vergr. 350. Nach N. PRINGSHEIM.
Als Beispiel oogamer Ulotrichales sei die Gattung Oedogonium[331] genannt, an die sich Bulbochaete anschließt. Während letztere verzweigte Zellfäden aufweist, hat erstere Gattung unverzweigte Fäden, deren Zellen einen aus zahlreichen zusammenhängenden Bändern bestehenden Chloroplasten besitzen. Die ungeschlechtlichen Schwärmsporen (Fig. 343 B) sind bei Oedogonium besonders groß, haben ein farbloses Vorderende, an dessen unterem Rande zahlreiche Zilien in Form eines Kranzes entspringen. Sie entstehen in Einzahl aus dem ganzen Inhalt einer Fadenzelle (Fig. 343 A) und schlüpfen unter Aufbrechen dieser Zelle aus, um alsbald zu neuen Fäden auszukeimen, nachdem sie sich mit ihrem farblosen Ende festgesetzt haben. Die Oogonien gehen aus einzelnen Fadenzellen hervor, indem diese tonnenförmig anschwellen und ihren Inhalt zu einer großen Eizelle ausbilden. Am oberen Ende des Oogoniums entsteht in der Membran ein Loch und unter diesem ein farbloser Empfängnisfleck an der Eizelle. An anderen Stellen desselben oder eines anderen Fadens werden die Spermien erzeugt, und zwar meist zu je zwei in relativ niedrig bleibenden Fadenzellen, den Antheridien. Die Spermien sind kleiner als die ungeschlechtlichen Schwärmsporen, aber wie diese mit einem Zilienkranz versehen. Sie schlüpfen durch die Öffnung in das Oogonium und verschmelzen mit der Eizelle, die dann zu einer großen derbwandigen Oospore wird. Bei der Keimung teilt sich ihr Inhalt in vier große Schwärmsporen, welche ausschlüpfen und neue Fäden bilden. Fig. 344 stellt die Bildung dieser Sporen für Bulbochaete dar.
Bei gewissen Oedogonien liegen die Verhältnisse weniger einfach. Die Spermien werden nämlich bei diesen in kleinen, nur aus wenigen Zellen bestehenden Pflänzchen, sog. „Zwergmännchen“ erzeugt. Diese Pflänzchen entwickeln sich aus spermienähnlichen Schwärmsporen (Androsporen), die sich nach dem Ausschwärmen auf den weiblichen Fäden, ja sogar auch direkt auf den Oogonien festsetzen und zu den wenigzelligen Zwergmännchen heranwachsen, deren obere Zellen die Spermien erzeugen. Fig. 343 C zeigt ein reifes Zwergmännchen auf einem noch geschlossenen Oogonium, D den Eintritt der Befruchtung, das Spermium auf dem Empfängnisfleck, die obere Wandung des Zwergmännchens deckelartig abgesprengt.
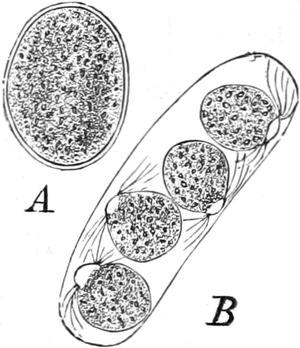
Fig. 344. Bulbochaete intermedia. A Oospore. B Bildung von vier Schwärmsporen aus der keimenden Oospore. Vergr. 250. Nach N. PRINGSHEIM.
Fig. 345. Coleochaete pulvinata. 1 Antheridium a und junges Oogon o, 2 Oogonium kurz vor der Öffnung, 3 dasselbe befruchtet, ek Eikern, sk Spermakern, 4 Oospore durch Umwachsung zur „Frucht“ entwickelt, 5 keimende Oospore. Nach OLTMANNS.
Die Gattung Coleochaete[332] zeichnet sich ebenfalls durch Oogamie aus (Fig. 345). Ihr flaschenförmiges Oogonium hat einen farblosen Hals, der sich an der Spitze zur Aufnahme des Spermiums öffnet. Die Antheridien sind endständig und erzeugen nur je ein mit zwei Geißeln versehenes Spermium. Die heranwachsende, kugelige Oospore wird in ein einschichtiges, pseudo-parenchymatisches Gewebe eingeschlossen, indem von der Tragzelle des Oogoniums und benachbarten Zellen Zellfäden aussprossen und sie dicht umhüllen. So entsteht eine Oosporenfrucht. Bei der Keimung führt der Kern der Oospore eine Reduktionsteilung aus. Hierauf entsteht ein 16–32zelliger Körper, der die Oosporenhülle durchbricht und aus jeder Zelle eine Schwärmspore entläßt, die sich zu einem neuen Thallus entwickelt. Coleochaete vermehrt sich ungeschlechtlich durch zweiwimperige Schwärmsporen, die in Einzahl in Thalluszellen gebildet werden.
4. Ordnung. Siphonocladiales. Die hierher gehörigen, meist reich verzweigten Algen unterscheiden sich von den Ulotrichales durch große, vielkernige Zellen, deren Chloroplasten entweder in Einzahl groß und netzförmig gestaltet erscheinen oder als zahlreiche kleine Plättchen auftreten.
Die Gattung Cladophora mit zahlreichen Arten im Süßwasser und im Meere kann als wichtigster Vertreter genannt werden. Cl. glomerata (Fig. 84) ist eine der häufigsten Flußalgen, oft fußlange verzweigte Fadenbüschel bildend, die an der Basis mit rhizoïdartiger Zelle festsitzen und Spitzenwachstum aufweisen, das bei anderen Vertretern der Ordnung noch nicht zur Ausbildung gelangt ist. Der Bau der Zellen ist aus Fig. 7, 9 und 18 zu ersehen. Die Verzweigung erfolgt an den oberen Enden der Zellen durch Ausstülpung und Abgrenzung von Astzellen. Die Vermehrung geschieht durch zweiwimperige (Fig. 346), bei den marinen Arten der Gattung durch vierwimperige Zoosporen, die in großer Zahl meist aus den oberen Zellen der Fäden entstehen und durch ein seitliches Loch aus diesen Sporangien austreten. Die geschlechtliche Fortpflanzungsweise ist Isogamie wie bei Ulothrix.
Nur bei einer Gattung, der im Süßwasser in Form einfacher Fäden vorkommenden Sphaeroplea annulina, ist die sexuelle Fortpflanzung zur Oogamie vorgeschritten.
Manche Vertreter der Ordnung leben im Meere, z. B. Siphonocladus, und haben zum Teil einen reich gegliederten, aber stets aus verzweigten Zellfäden aufgebauten Thallus, der bei gewissen Gattungen durch Kalkinkrustationen eine korallenartige Beschaffenheit annimmt. Als Beispiel solcher Kalkalgen sei die zierliche, im Mittelmeer heimische Acetabularia mediterranea (Fig. 347) genannt. Der dünne Stiel des Thallus sitzt mittels einiger Rhizoiden fest, der Schirm besteht aus zahlreichen, dicht zu einer Fläche zusammenschließenden radialen Schläuchen, deren jeder als ein Gametangium aufzufassen ist. Ihr Inhalt aber bildet die zweiwimperigen Gameten nicht direkt, sondern zerfällt erst in eine große Zahl derbwandiger Zysten, welche ruhend überwintern und dann zahlreiche, paarweise kopulierende Gameten entlassen. Die Zygoten keimen sehr bald und wachsen schrittweise zu neuen Pflanzen heran.
Fig. 346. Cladophora glomerata. Schwärmspore. Vergr. 500. Nach STRASBURGER. Hierzu Fig. 84.
Fig. 347. Acetabularia mediterranea. Kalkalge. Nat. Gr. Nach OLTMANNS.
5. Ordnung. Siphonales. Die Siphoneen oder Schlauchalgen unterscheiden sich von den vorhergehenden Gruppen dadurch, daß in ihrem äußerlich mehr oder weniger reich gegliederten Thallus zunächst keine Querwände vorhanden sind. Die Zellhaut umschließt somit eine einzige Plasmamasse, in welcher zahlreiche Zellkerne und zahlreiche kleine grüne Chloroplasten enthalten sind. Ähnliche Thallusformen kehren bei den Phycomyceten oder Algenpilzen wieder.
Die meisten Siphoneen leben im Meere und gehören infolge ihres eigenartig gegliederten Thallus zu den interessantesten Algentypen. So besitzt die in vielen Arten in wärmeren Meeren vertretene Gattung Caulerpa[333] eine kriechende, an der Spitze fortwachsende Hauptachse, die nach unten farblose Rhizoiden in den Boden entsendet, nach oben dagegen grüne, bei den einzelnen Arten sehr verschieden gestaltete Thallusglieder trägt. Bei der mediterranen C. prolifera (Fig. 348) sind diese Glieder blattartig, entweder einfach oder durch wiederholte Aussprossungen verzweigt. Dabei umschließt die ganze Pflanze nur einen einzigen Zellraum, der von netzförmig verbundenen Zellstoffbalken durchsetzt wird. In den farblosen Thallusteilen enthält das Plasma stärkebildende Leukoplasten.
Die Gattung Bryopsis hat einen zierlich federförmig verzweigten Thallus[334]. Bei den in wärmeren Meeren lebenden Halimeda-Arten setzt er sich aus scheibenförmigen Gliedern, ähnlich wie eine Opuntia im kleinen, zusammen und erhält durch Kalkablagerungen eine korallenartige Beschaffenheit. Die Glieder sind aus verzweigten und miteinander verflochtenen Schläuchen gebildet.
Bei Bryopsis hat sich eine Differenzierung der kopulierenden zweiziligen Gameten in größere, mit einem grünen Chromatophor versehene weibliche und dreimal kleinere, nur ein kleines gelbliches Chromatophor führende männliche vollzogen; bei Vaucheria und Dichotomosiphon ist bereits Oogamie scharf ausgeprägt[335]. Diese letzteren Algen kommen im Süßwasser vor oder bilden auf feuchtem Boden kleine Rasen. Ihr Thallus besteht aus einem fadenförmigen, verästelten und im Substrat mit farblosen Rhizoïden befestigten Schlauch (Fig. 349 D).
Die Bildung der ungeschlechtlichen Schwärmsporen geschieht bei Vaucheria in anderer Weise als bei den übrigen Siphonales. Einzelne Zweigenden schwellen zur Bildung des Sporangiums etwas an und grenzen sich mit einer Querwand ab (Fig. 349). Der Inhalt der Endzelle verwandelt sich nun in eine einzige, sehr große, grüne, mit bloßem Auge schon sichtbare Schwärmspore, die einen farblosen, zahlreiche Kerne enthaltenden Saum besitzt und vor jedem Kern je zwei Zilien hervorstreckt. Bei der Entleerung reißt der Sporangiumscheitel auf, und die Spore zwängt sich unter Drehung um ihre Längsachse aus der Öffnung hervor. Morphologisch entspricht die Vaucheriaspore der Gesamtheit der Zoosporen eines gewöhnlichen Sporangiums.
Fig. 348. Caulerpa prolifera. Die feinen Linien auf den Thallusblättern bezeichnen die Plasmaströme. a Fortwachsende Spitze der Thallusachse, bb junge Thalluslappen, r Rhizoïden. 1⁄2 nat. Gr.
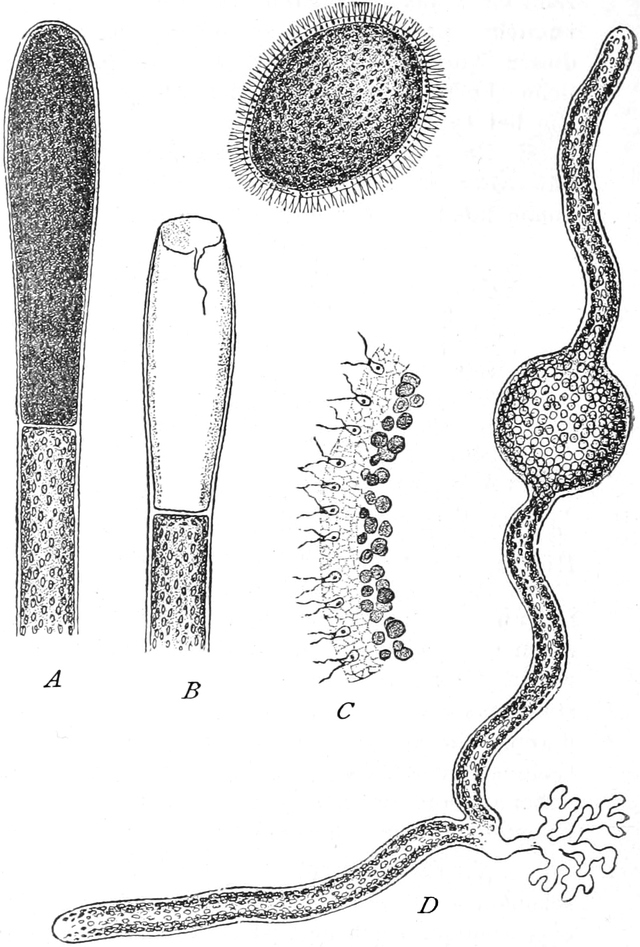
Fig. 349. Vaucheria sessilis. A Anlage des Sporangiums. B Aus dem Sporangium ausgeschlüpfte Zoospore. C Ein Stück der Peripherie einer Zoospore. D Keimpflanze aus einer Zoospore mit Rhizoïd. A, B nach GÖTZ, D nach SACHS, aus OLTMANNS Algen, C nach STRASBURGER.
Die sexuelle Fortpflanzung von Vaucheria weicht bedeutend von der Gametenkopulation der übrigen Siphoneen ab, ist aber von dieser als der ursprünglicheren Befruchtungsart abzuleiten. Oogonien und Antheridien entstehen an den Thallusfäden als Ausstülpungen, die durch eine Scheidewand abgegrenzt werden (Fig. 350 o und a). Die Oogoniumanlage enthält anfangs zahlreiche Kerne, die aber nach OLTMANNS und HEIDINGER alle bis auf den zurückbleibenden einzigen Eikern vor der Scheidewandbildung wieder in den Tragfaden zurückwandern. Im reifen Zustande besitzt das Oogon eine schnabelartige, mit farblosem Plasma angefüllte Vorstülpung, an welcher es sich öffnet. Ein Ballen Plasma tritt zunächst aus, und die Eizelle rundet sich ab. Das in seiner Anlage ebenfalls vielkernige Antheridium ist mit seinem Tragast ein hornförmig gekrümmtes Gebilde (a); es bildet einkernige Spermien, öffnet sich bei der Reife an seiner Spitze und entleert seinen schleimigen Inhalt, aus dem die winzigen, völlig farblosen, mit zwei seitlich inserierten Zilien versehenen Spermien herausschwärmen, um an dem farblosen Empfängnisfleck des Oogoniums sich anzusammeln. Ein Spermium dringt ein und vollzieht die Befruchtung durch Verschmelzung seines Kerns mit dem Eikern. Die befruchtete Eizelle umgibt sich mit einer Membran, geht als Oospore in einen Ruhezustand über und keimt dann zu einem neuen Faden aus.
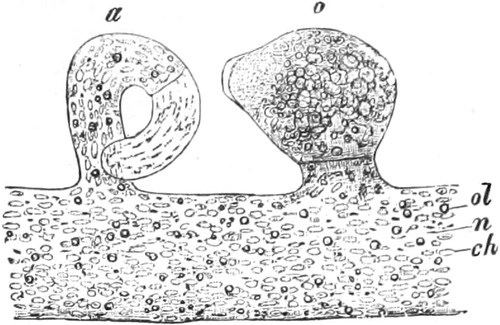
Fig. 350. Vaucheria sessilis forma repens. Fadenstück mit Oogonium o, Antheridium a, ch Chromatophoren, n Zellkerne, ol Öltropfen. Vergr. 240. Nach STRASBURGER.
Die Phaeophyceen scheinen wie die Chlorophyceen ihren phylogenetischen Ausgang von Flagellaten genommen zu haben; in ihrer vegetativen Gestaltung erreichen sie aber höhere Stufen als die Grünalgen.
Sie sind mit Ausnahme einiger Süßwasserarten Meeresalgen, die ihre größte Entwicklung in den kälteren Ozeanen finden. In der Gestalt ihres Thallus herrscht eine ungemeine Mannigfaltigkeit. Die einfachsten Vertreter (z. B. Ectocarpus) zeigen unverzweigte oder verzweigte, festsitzende Fäden, die aus einfachen Zellreihen bestehen. Sodann gibt es Formen mit zylindrischem, reich verzweigtem, vielzelligem Thallus, z. B. Cladostephus, dessen Hauptzweige mit dichtem Filz von kurzen vielzelligen Seitenzweigen bedeckt sind (Fig. 89), oder mit bandförmigem, dichotomisch verzweigtem, vielzelligem Thallus (z. B. Dictyota, Fig. 83). Diese Vertreter wachsen an ihren Thallusenden vielfach mittels großer Scheitelzellen weiter (Fig. 89 und 90). Andere Arten haben scheiben- oder blasenförmigen Thallus.
Die höchste Entwicklung erfahren die Braunalgen in den Ordnungen der Laminariaceen und Fucaceen. Zu den ersteren gehört die in den nördlichen Meeren verbreitete Gattung Laminaria, deren Thalli einem großen einfachen oder gefingerten, gestielten Blatt gleichen, das an seiner Stielbasis mittels eines verzweigten, wurzelähnlichen Haftorganes befestigt ist.
Bei Laminaria digitata und L. Cloustoni (Fig. 352) zeigt das handförmig geteilte Thallusblatt ein sehr eigenartiges Wachstum, indem es an seiner Basis eine interkalare wachstumsfähige Zone besitzt, die jährlich gegen Ende des Winters ein neues Blatt auf dem perennierenden Stiel erzeugt. Das alte wird dabei emporgehoben und stirbt allmählich ab; das neue spaltet sich in mehrere zugespitzte Lappen. Die Laminarien erreichen riesige Dimensionen; so wird der Zuckertang L. saccharina (Nordsee) mit ungeteiltem, ebenfalls sich jährlich erneuerndem Thallusblatt bis 3 m lang und der Stiel über 1 cm dick.
Die größten Thalli unter den Phaeophyceen besitzen gewisse Laminariaceen der kälteren Ozeane, vor allem die Macrocystis pyrifera (Fig. 351). Ihr in einer Tiefe von 2–25 m festsitzender Thallus verzweigt sich nach SKOTTSBERG[336] anfangs dichotomisch. Einzelne Thallussprosse wachsen zur Wasseroberfläche und an dieser flottierend zu großer Länge heran; ihre Achsen tragen einseitig lange herabhängende Thalluslappen, die an der Basis je eine große Schwimmblase besitzen und durch Spaltung der endständigen weiterwachsenden Thallusfläche gebildet werden. SKOTTSBERG maß in der Antarktis Exemplare von 70 m Länge, FRYE, RIGG und CRANDALL bestimmten an der kalifornischen Küste die Thalluslänge bis zu 45,7 m. Sehr bemerkenswert sind ferner die antarktischen Lessonia-Arten, die eine schenkeldicke verzweigte Hauptachse mit überhängenden langen Thallusblättern an den Zweigen entwickeln und mehrere Meter Höhe erreichen, also Algen mit baumartigen Habitus vorstellen.
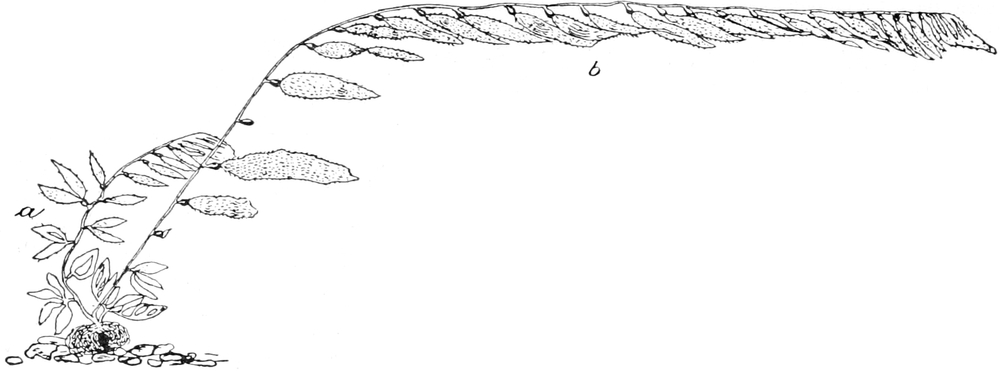
Fig. 351. Macrocystis pyrifera Ag. a Junger, b älterer Thallussproß. 1⁄80 nat. Gr. Nach Skottsberg.
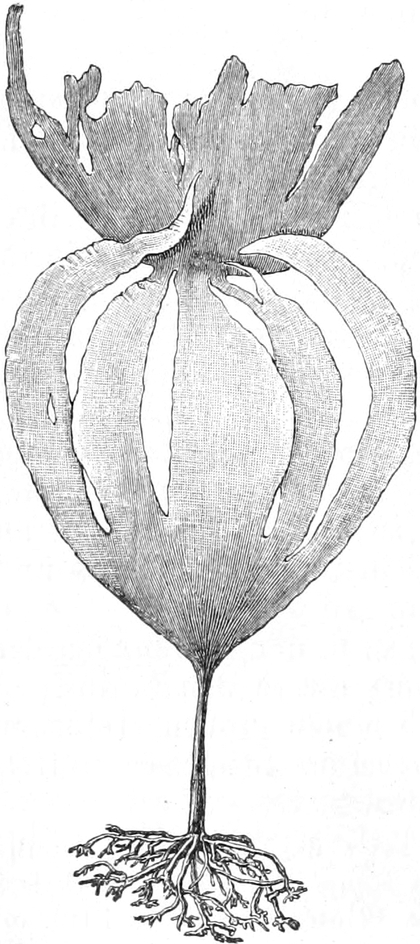
Fig. 352. Laminaria Cloustoni, Nordsee. Sporophyt im April-Stadium. Auf 1⁄3 verkleinert. Offizinell.
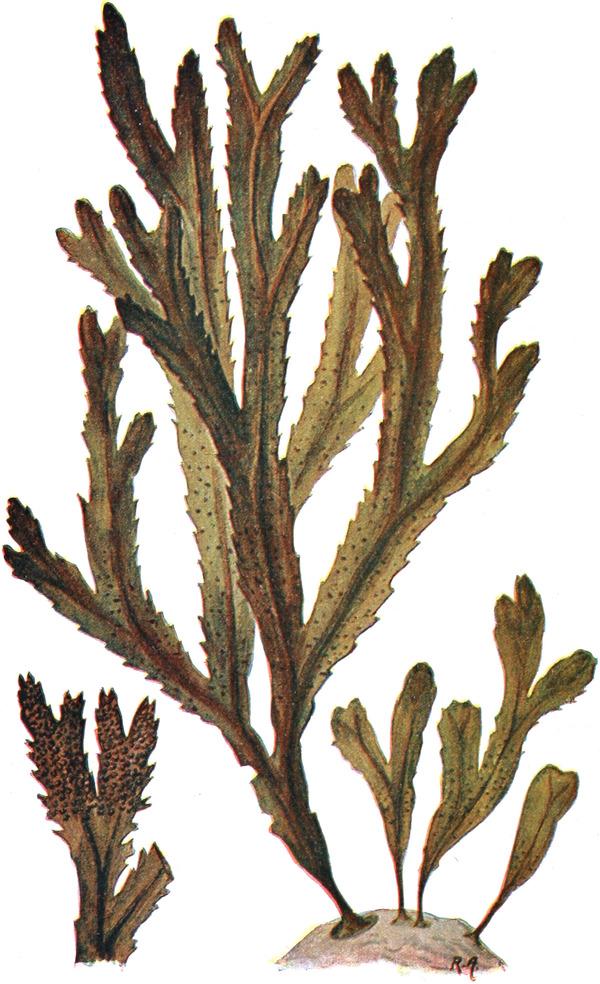
Fig. 353. Fucus serratus, Helgoland. 1⁄3 nat. Gr. Links Endstück eines älteren Thallus mit Konzeptakeln.
Die Fucaceen[337] bleiben hinter den Laminarien an Größe zurück. Am bekanntesten sind von nordeuropäischen Formen Fucus vesiculosus, der Blasentang, mit runden luftführenden Blasen in dem bandförmigen, gabelig verzweigten Thallus, F. platycarpus ohne Blasen, F. serratus mit gezähntem Thallus (Fig. 353). Sie sitzen mit Haftscheiben dem Substrat an und wachsen gesellig in der Brandungszone; ihr Thallus erreicht über 1 m Länge. Die höchste Gliederung erlangt der Thallus bei Sargassum durch eine scharfe Sonderung in zylindrische Achsen und in Seitenäste, die je nach ihrer Funktion laubblattartig, hochblattartig oder als fruktifizierende Seitenäste oder endlich als Schwimmblasen ausgebildet erscheinen.
Bemerkenswert sind die Sargassum-Arten, die in wärmeren Zonen der Ozeane oft in großen, lebhaft bräunlichgelben Massen freischwimmend auftreten. In dem nach ihnen benannten Sargasso-Meer des Atlantischen Ozeans treten nach BÖRGESEN zwei Arten, S. natans (= S. bacciferum) und S. fluitans mit solcher ausschließlich pelagischer Lebensweise auf; sie vermehren sich seit altersher nur durch vegetative Sprossung und stammen ursprünglich wohl von festsitzenden Arten der westindischen und tropisch amerikanischen Küsten ab[338]. Auch im Pazifischen Ozean kommt S. natans vor.
Die Zellen der Phaeophyceen[339] enthalten meist nur einen Zellkern und mehrere scheibenförmige, ovale oder gelappte, braune Chromatophoren, die den Algen eine gelbbraune oder dunkelbraune Gesamtfärbung verleihen; außer den allgemein verbreiteten Chlorophyllfarbstoffen enthalten sie noch einen besonderen gelben Farbstoff, das Phykoxanthin (Fucoxanthin). Als Stoffwechselprodukt entsteht hieraus Glykose das Polysaccharid Laminarin, das als Reservestoff dient, ferner auch Mannit. In den Zellen findet man allgemein verbreitet blasenartige Vakuolen, die einen gerbstoffartigen Stoff, Fucosan, ein Nebenprodukt des Assimilationsprozesses enthalten. Bei den höheren Formen zeigt sich bereits eine ziemlich weitgehende anatomische Differenzierung des Thallus. Die äußeren Zellschichten sind in der Regel als Assimilationsgewebe ausgebildet, die inneren als Speicherzellen. Bei den Laminariaceen und Fucaceen finden sich im Thallus Schläuche, die wie die Siebröhren der Kormophyten gebaut sind und wohl auch der Leitung eiweißartiger Stoffe dienen (vgl. S. 69).
Selbst bei den stattlichsten Meeresalgen, auch bei den Rotalgen, fehlen in den Geweben allgemein die lufterfüllten Interzellulargänge. Nach KNIEP ist sowohl der assimilatorische Gaswechsel als auch besonders der Atmungsstoffwechsel dickfleischiger Algen dementsprechend sehr träge; andererseits sollen Gase sehr leicht durch Algenmembranen diffundieren können.
Wir unterscheiden vier Ordnungen der Braunalgen. Die Phaeosporeen umfassen die Formen mit einfacherem Bau ihres meist fädigverzweigten Thallus; sie vermehren sich ähnlich wie die einfacheren fadenförmigen Grünalgen ungeschlechtlich durch Zoosporen, geschlechtlich durch zilientragende Gameten. Auf höherer Stufe stehen zunächst die Tilopteridaceen und Dictyotaceen, bei denen die Sexualzellen in große unbewegliche Eizellen und kleine zilientragende Spermien geschieden sind. Die Sexualorgane werden bei ihnen an besonderen Individuen erzeugt, den Geschlechtspflanzen oder Gametophyten; aus der befruchteten Eizelle geht eine der geschlechtlichen gleichgestaltete ungeschlechtliche Generation, der Sporophyt, hervor, der ungeschlechtliche Sporen erzeugt. So ist also hier ein regelmäßiger Generationswechsel ausgeprägt, der übrigens bei gewissen Phaeosporeen auch schon hervortritt. Auch bei den Laminariaceen herrscht Oogamie und regelmäßiger Generationswechsel; Sporophyt und Gametophyt sind aber wesentlich voneinander verschieden, der letztere nur ein kleines fädig verzweigtes Zwergpflänzchen. Die Fucaceen zeichnen sich durch Oogamie aus, erzeugen keine Sporen und entbehren also des Generationswechsels.
Die Zoosporen, Gameten und Spermien besitzen spindelförmige Gestalt, stets einen roten Augenfleck und zwei seitlich eingefügte Geißeln, eine nach vorn, die andere nach hinten gerichtet. Sie haben große Ähnlichkeit mit gewissen gelbbraunen Flagellaten.
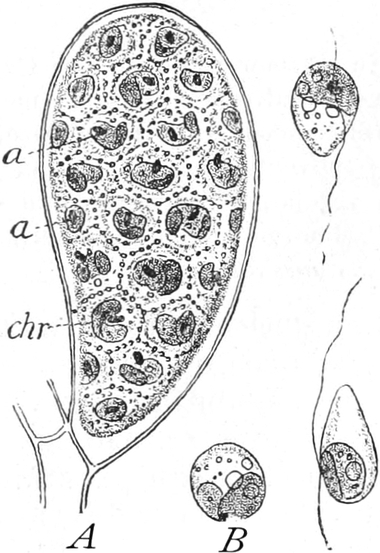
Fig. 354. A Pleurocladia lacustris. Unilokuläres Sporangium mit noch eingeschlossenen Zoosporen, a Augenfleck, chr Chromatophor nach KLEBAHN. B Chorda filum, Zoosporen nach REINKE. Aus OLTMANNS, Algen.
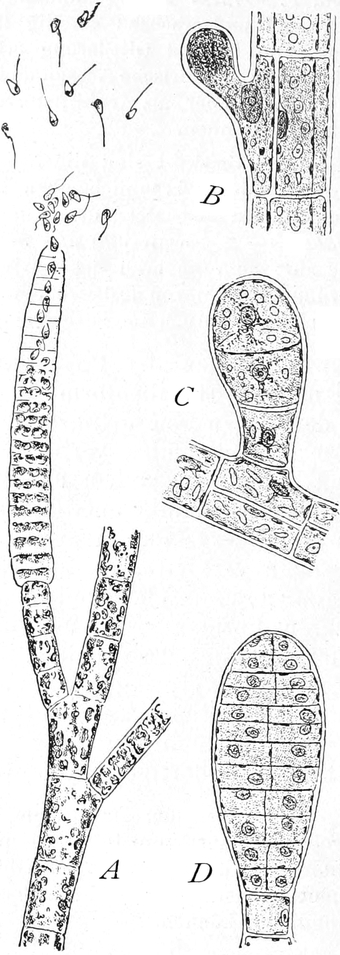
Fig. 355. A Ectocarpus siliculosus. Plurilokuläres Sporangium in Entleerung (nach THURET). B, C, D Sphacelaria cirrhosa, desgl. in Entwicklung nach REINKE. Aus OLTMANNS, Algen.
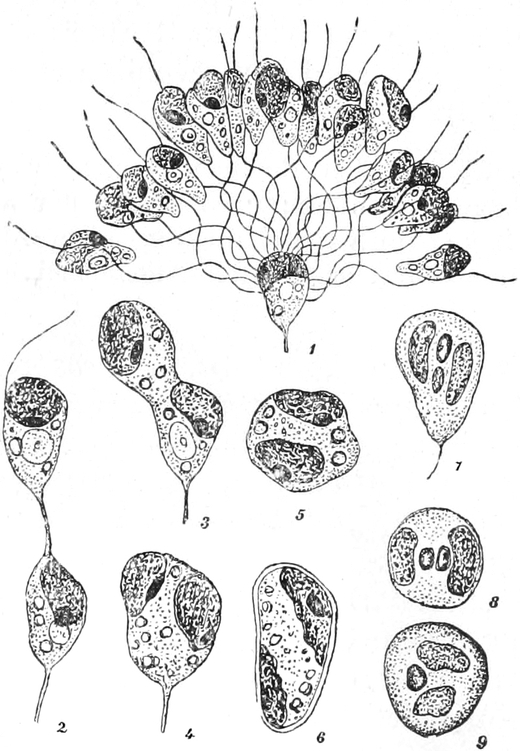
Fig. 356. Ectocarpus siliculosus. 1 Weiblicher Gamet von vielen männlichen Gameten umgeben, von der Seite gesehen. 2–5 Verschmelzung der Gameten. 6 Keimling nach 24 Stunden. 7–9 Vereinigung der Zellkerne bei der Kopulation, nach fixiertem und gefärbtem Material, 1–5 nach BERTHOLD, 6–9 nach OLTMANNS.
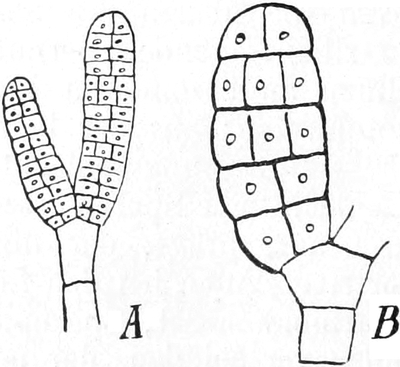
Fig. 357. A Antheridium. B Oogonium von Cutleria multifida. Vergr. 400. Nach REINKE.
1. Ordnung. Phaeosporeae. Hierher gehört die Mehrzahl der Formen. Sie vermehren sich durch ungeschlechtliche Schwärmsporen, die in großer Anzahl in einfächerigen (unilokulären) Sporangien erzeugt werden und nach dem Ausschwärmen bald keimen (Fig. 354).
Außer einfächerigen werden von den Phaeosporeen auch mehrfächerige (plurilokuläre) Sporangien erzeugt (Fig. 355), die in jedem Zellenfach nur eine, selten mehrere Schwärmsporen bilden. Bei einigen Gattungen ist Kopulation dieser Schwärmsporen beobachtet worden. Wir haben sie demnach als Planogameten und ihre Sporangien als Gametangien zu bezeichnen. Allerdings ist die Sexualität verschieden stark ausgeprägt, und die aus plurilokulären Sporangien entlassenen Schwärmer keimen vielfach auch ohne Kopulation zu neuen Pflanzen, wie dies unter den Chlorophyceen auch für Ulothrix bemerkt wurde.
Als Beispiel für Kopulation sei Ectocarpus siliculosus (Fig. 355) genannt, bei dem bereits ein Unterschied in dem Verhalten der im übrigen gleichgestalteten Gameten festzustellen ist, derart, daß männliche und weibliche, beide in besonderen, diözisch oder monözisch verteilten Gametangien erzeugt, zu unterscheiden sind. Die weiblichen Gameten setzen sich fest und zahlreiche männliche Gameten berühren sie mit ihren Zilien. Schließlich verschmilzt ein männlicher Gamet mit dem weiblichen zu einer Zygote (Fig. 356 2–9), die zuletzt nur einen Kern, aber zwei Chromatophoren enthält, sich mit einer Membran umgibt und dann ohne Ruhezustand zu einer neuen Pflanze heranwächst.
Bei anderen Phaeophyceen ist der Unterschied zwischen den Gameten auch in Form und Größe ausgeprägt, und besonders in der Familie der Cutleriaceen ist ein entschiedener Übergang von Isogamie zur Oogamie, eine Differenzierung der Gametangien in Antheridien und Oogonien (Fig. 357), festzustellen.
Bei gewissen Phaeosporeen hat sich bereits ein regelmäßiger Generationswechsel herausgebildet, so u. a. bei den Cutleriaceen[340]. Die haploiden geschlechtlichen Pflanzen alternieren mit diploiden ungeschlechtlichen, an denen die Reduktionsteilung in den Zoosporangien sich vollzieht. Bei Zanardinia sind beide Generationen gleich gestaltet, besitzen einen scheibenförmigen Thallus, bei Cutleria dagegen sind sie verschieden, indem die Sexualpflanzen aufrechte gabelig zerschlitzte Sprosse, die Sporangienpflanzen (Aglaozonia) dagegen flache, gelappte, niederliegende Scheiben vorstellen. Der Generationswechsel wird indessen bei Cutleria nicht überall strenge eingehalten; aus Sporangienpflanzen oder aus Geschlechtspflanzen können auch die gleichnamigen Generationen wieder hervorgehen. Die Eizellen entwickeln sich öfters parthenogenetisch zu Sporophyten.