ERSTER TEIL Allgemeine Botanik. (continued 7)
Reading edition
An die Insektivoren schließen sich gewisse phanerogame Parasiten[182] an, die oben S. 221 nicht erwähnt worden sind, weil sie durch den Besitz grüner Blätter schon anzeigen, daß sie bezüglich des Kohlenstoffes autotroph sind. Trotzdem sind sie ausgesprochene Parasiten, die sich nur dann normal entwickeln, wenn ihr Wurzelsystem mit fremden Wurzeln oder zur Not auch mit denen der Artgenossen durch Haustorien verbunden ist. So leben z. B. die Santalacee Thesium und auch viele Rhinanthaceen; von letzteren zeigt Tozzia, zumal in den ersten Entwicklungsstadien, die parasitische Lebensweise am meisten ausgeprägt. Unsere einheimische, in Baumkronen wurzelnde Mistel besitzt, wie viele ihrer fremdländischen Verwandten (Loranthaceen), ebenfalls noch stattliche Blätter und ist so reich an Chlorophyll, daß sie ihren Bedarf an Kohlehydraten vollständig selbst zu decken vermag. Wasser und Nährsalze aber entnimmt sie der Wirtspflanze. Dementsprechend ist ihr Wurzelsystem weitgehend reduziert. Das gleiche trifft auch für die oben genannten Rhinanthaceen zu. In welcher Form sie die Nährsalze aus dem Wirt entnehmen, ist indes noch unbekannt.
In scharfem Gegensatz zu den Karnivoren, die vielleicht durch organisch gebundenen Stickstoff gefördert werden, stehen gewisse Mikroorganismen, die bezüglich ihres Stickstoffgewinnes autotroph, bezüglich ihrer Kohlenstoffassimilation dagegen durchaus heterotroph sind. Wir sprechen von den Organismen, die imstande sind, den atmosphärischen Stickstoff zu binden. Der Nachweis ihrer Existenz wurde erst am Ende des vorigen Jahrhunderts, vor allem durch die Arbeiten von WINOGRADSKY, HELLRIEGEL und WILFARTH erbracht[183].
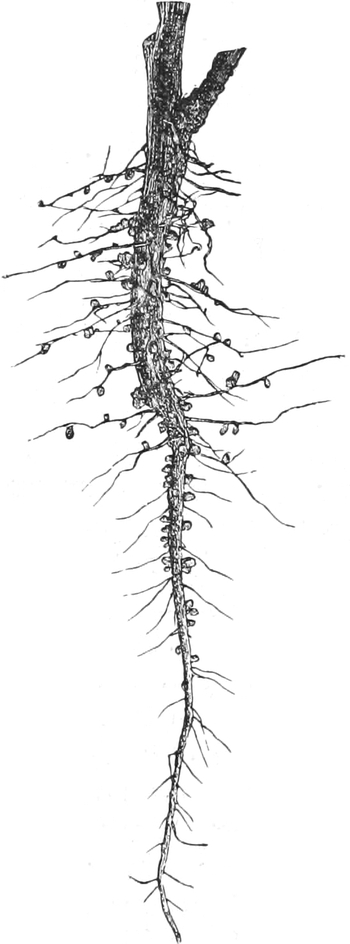
Fig. 249. Eine aus dem Boden gehobene Wurzel der Feldbohne (Vicia faba), dicht besetzt mit Bakterienknöllchen. Verkleinert. Nach NOLL.
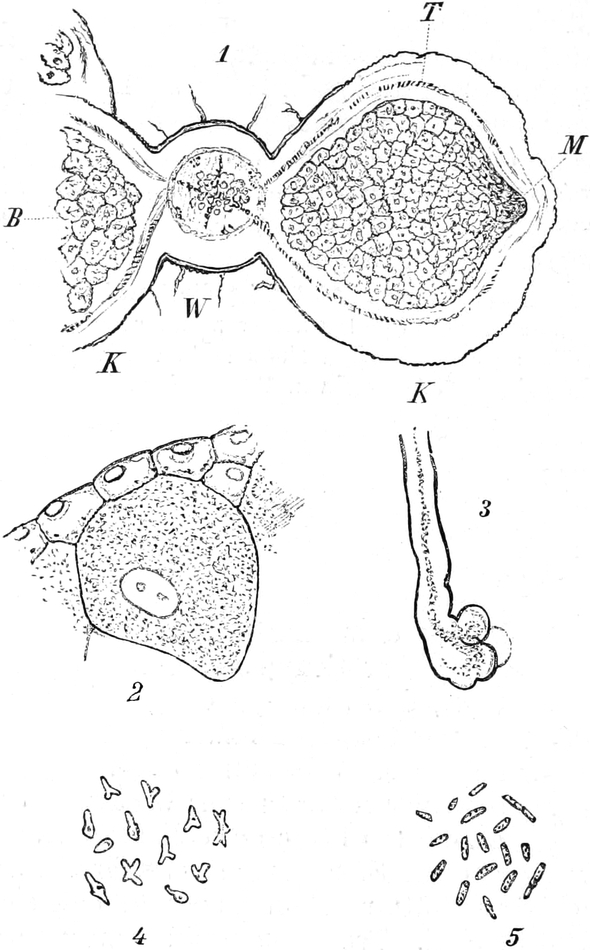
Fig. 250. 1 Junge Knöllchen K auf einer Wurzel W von Vicia faba. B Großzelliges mit Bakterienmasse angefülltes Gewebe, bei M dessen „Meristem“. T Tracheïdenzüge. Vergr. 60fach. 2 Eine mit Tausenden von Bakterien erfüllte Zelle des Knöllchens, mit benachbarten nicht infizierten Zellen. Vergr. 320fach. 3 Ein infiziertes Wurzelhaar mit dem „Infektionsfaden“ im Innern. Vergr. 320fach. 4 Formen von „Bakteroiden“. 5 Unveränderte Bakterien. Vergr. 1200fach. Nach NOLL.
Es sind zunächst einmal gewisse heterotrophe Bakterien, wie Clostridium Pasteurianum und Verwandte sowie Azotobacter chroococcum, die im einzelnen unter recht verschiedenen äußeren Bedingungen im Boden des Ackers freien Stickstoff binden und damit eine für ihr eigenes Gedeihen wie für das vieler anderer Organismen außerordentlich wichtige Eigenschaft besitzen, die auch für die Landwirtschaft von großer Bedeutung ist. Im Wasser scheinen wieder andere Bakterien im gleichen Sinne tätig zu sein. Eine nach neueren Untersuchungen immer größer werdende Zahl niederer Pilze scheint die gleiche Befähigung, wenn auch meist in geringerem Grade, zu besitzen. Neben diesen freilebenden gibt es auch noch im Innern von höheren Pflanzen auftretende Mikroorganismen von gleicher Wirksamkeit. Unter diesen sind am besten studiert die verschiedenen Formen des Bacillus radicicola, die die Wurzeln von Leguminosen befallen und an ihnen in oft großer Zahl gallenartige Knöllchen (Fig. 249 u. 250) erzeugen. Soviel wir wissen, handelt es sich hier um eine Art gegenseitigen Parasitismus, d. h. um eine auf wechselseitiger Ergänzung beruhende Lebensgemeinschaft, wie sie von DE BARY als Symbiose bezeichnet worden ist. Die Leguminosen erscheinen dann, abweichend von den meisten grünen Pflanzen, als Stickstoffsammler[184], was durch GILBERT und LAWES in England, durch SCHULTZ-LUPITZ in Deutschland zuerst festgestellt worden ist.
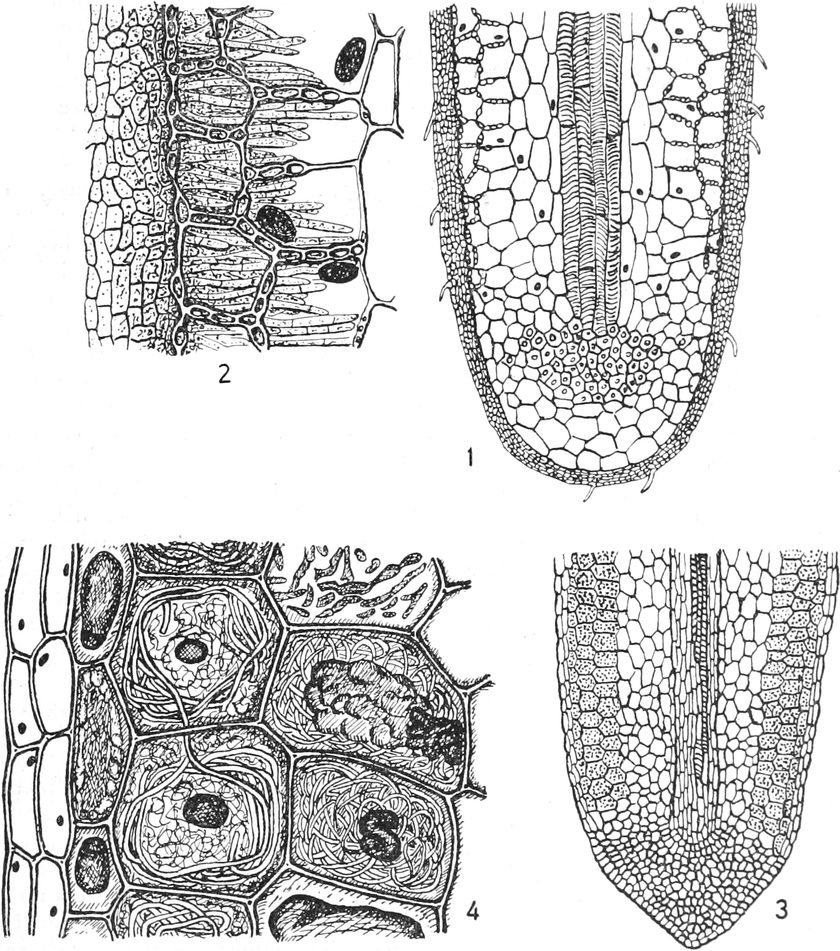
Fig. 251. 1 Längsschnitt durch die Wurzelspitze von Pinus silvestris mit ektotropher Mykorrhiza. Vergrößert. 2 Ein Teil der Fig. 1 stärker vergrößert; vom äußeren Pilzmantel gehen Hyphen aus, die zwischen die Zellen der Rinde dringen. 3 Längsschnitt durch die Wurzelspitze von Neottia. Drei Zellreihen mit dunklem Inhalt führen die Pilze (endotrophe Mykorrhiza). Vergrößert. 4 Ein Teil der Fig. 3 stärker vergrößert. Die mittlere pilzbewohnte Schicht besteht aus Pilzwirtzellen, in denen die Pilze erhalten bleiben; die äußere und die innere sind Verdauungszellen. Nach WERNER MAGNUS. (KNY, Wandtafeln.)
Die stabförmigen Bakterien dringen durch die Wurzelhaare, deren Wand sie lokal zur Aufquellung bringen, in die Rinde der Wurzel ein, verursachen hier die genannten Wucherungen der Parenchymzellen und füllen diese mit einer Bakterienmasse an, die schließlich in abnorm gebildete vergrößerte und verzweigte, aber noch wachstums- und teilungsfähige Formen, die sog. Bakteroiden, übergeht. Während die Bakterien von dem Überschuß der Kohlehydrate ihres Wirtes, in der ersten Zeit auch noch von dessen Eiweiß zehren, kommt den Bakteroiden die Fähigkeit zu, den atmosphärischen Stickstoff zu binden. Die Leguminose aber kann andauernd den Bakteroiden den gebundenen Stickstoff entziehen. Man hat berechnet, daß Lupinen pro Hektar auf diesem Wege bis zu 200 kg Stickstoff zu gewinnen vermögen, also mehr als in 300 Doppelzentnern Stallmist durchschnittlich enthalten ist. Demnach hat diese Stickstoffbindung eine große Bedeutung für die Landwirtschaft, und man sucht sie durch Impfung der Felder mit wirksamem Boden oder mit Reinkulturen besonders virulenter Bakterien zu fördern. Bei der Kultur der Seradella (Leguminose) ist denn auch durch Impfung eine erhebliche Steigerung der Produktion erzielt worden; während der ungeimpfte Boden 5 kg Frischgewicht pro Ar ergab, wurden nach Impfung 400 kg pro Ar geerntet. — Stehen der Leguminose genügend Nitrate im Boden zur Verfügung, so vermag sie mit diesen vorzüglich zu gedeihen; da die Nitrate zugleich auf Bacillus radicicola schädlich wirken, so kommt es unter diesen Umständen gar nicht zur Knöllchenbildung.
Außer bei den Leguminosen kommen auch bei Alnus, Elaeagnus und Casuarina regelmäßig Wurzelknöllchen durch Infektion mit niederen Pflanzen zustande. Elaeagnus und Alnus können den freien atmosphärischen Stickstoff assimilieren, wenn ihre Wurzeln Knöllchen besitzen. Auch Podocarpus hat die gleiche Befähigung. Hier aber handelt es sich um die Verbindung der Wurzel mit einem Pilz, um eine „Mykorrhiza“[185].
Eine Mykorrhiza findet sich bei zahlreichen Pflanzen, vor allem solchen, die im Humus der Wälder und Heiden leben. Man unterscheidet zwei Extreme, die durch Zwischenstufen verbunden sind, als ekto- und endotrophe Mykorrhiza. Bei der ersteren (Fig. 251, 1, 2) umgibt ein Mantel von Pilzhyphen die Wurzel und umhüllt auch schon deren Vegetationspunkt (viele unserer Bäume, Monotropa); bei der letzteren (Fig. 251, 3, 4) lebt der Pilz in den Zellen gewisser Wurzelschichten und sendet nur einzelne Fäden in den Boden (Orchideen, Ericaceen, viele Liliaceen). — Die endotrophen Mykorrhizapilze werden von den Zellen der Wurzel teilweise verdaut; es müssen also alle dabei freiwerdenden Stoffe der Phanerogame zugute kommen. Wenn auch noch nicht ganz sichergestellt ist, ob der Pilz die Fähigkeit hat, atmosphärischen Stickstoff zu binden, so kann man doch wohl sagen, die endotrophe Mykorrhiza sei einigermaßen klargelegt. Sie ist auch in manchen Fällen als eine ganz unentbehrliche Assoziierung erkannt, insofern als bei den Orchideen vielfach schon die Keimung, bei den Ericaceen die Weiterentwicklung des Keimlings unterbleibt, wenn der Pilz fehlt. Weniger klar liegen die Verhältnisse bei der ektotrophen Mykorrhiza. Hier stehen sich noch immer mehrere Anschauungen unvermittelt gegenüber: nach der einen soll der Pilz ein reiner, also auch im Grunde schädlicher Parasit sein; nach der zweiten ist die Blütenpflanze der Parasit; die dritte nimmt eine wirkliche Symbiose zwischen beiden Organismen an und stellt sich mit STAHL die Beziehungen zwischen beiden etwa in folgender Art vor: der Pilz nimmt sehr energisch Nährsalze aus dem Boden und versorgt mit diesen auch die autotrophe Blütenpflanze; diese liefert dem Pilz dafür organische Nahrung. Da aber eine ektotrophe Mykorrhiza sich auch bei farblosen Phanerogamen (z. B. Monotropa) findet, so muß wenigstens hier an einen Parasitismus der Blütenpflanze gedacht werden.
Das gleiche dürfte bei endotropher Mykorrhiza für die nichtgrünen Orchideen (Neottia, Coralliorhiza, Epipogon) gelten, die also nicht saprophytisch vom Humus leben, sondern offenbar von den Mykorrhizapilzen ernährt werden.
Die Konsortien von Algen und Pilzen, die man Flechten nennt, finden gewöhnlich eine Deutung, die der dritten bei der ektotrophen Mykorrhiza angeführten entspricht[186].
Neuerdings sind in den Blättern von tropischen Pflanzen (Rubiaceen und Myrsinaceen) Knöllchen gefunden worden, die einer Infektion durch Bakterien ihren Ursprung verdanken. Während aber bei den Leguminosen die Infektion immer von dem zufälligen Zusammentreffen zwischen Bakterien und Blütenpflanze abhängt, wird bei den genannten Pflanzenfamilien schon dem Embryo in der Mutterpflanze eine gewisse Bakterienmasse mitgegeben; und wenn diese künstlich ferngehalten wird, erfolgt die Entwicklung bei Ardisia anomal. Daß auch hier eine Assimilation von freiem Stickstoff stattfindet, ist wenigstens für die Rubiaceen erwiesen[187].
C. Assimilation der übrigen Stoffe.
Die Schwefelsäure schließt sich im Stoffwechsel der Pflanze am engsten an den Stickstoff an, da sie ja ebenfalls zum Aufbau von Eiweißstoffen, die etwa 1⁄2–11⁄2% S enthalten, Verwendung findet. Wo und unter welchen Bedingungen ihre Assimilation stattfindet, ist noch unklar; nur so viel ist bekannt, daß dabei eine Reduktion stattfinden muß. Bei einigen Pflanzen findet Schwefel nicht nur im Eiweiß, sondern auch in anderen Verbindungen Verwendung.
Die Phosphorsäure schließt sich insofern an die Schwefelsäure an, als sie zum Aufbau wenigstens gewisser Proteïnsubstanzen (Nukleoalbumine) und vor allem der Nukleoproteïde der Zellkerne in einer Menge von 0,3–3% dient. Im Gegensatz zur Schwefelsäure wird die Phosphorsäure bei ihrer Aufnahme in diese Moleküle nicht reduziert. Auch die in keiner Pflanze fehlenden Lezithine (vgl. S. 222) enthalten Phosphor; ebenso das besonders im Samen auftretende Phytin.
Die Metalle. Kalium, Kalzium, Magnesium und Eisen sind, wie z. B. durch die Wasserkulturmethode gezeigt wurde, ebenso unentbehrlich wie irgendeiner der bisher besprochenen Stoffe; es ist zum mindesten für Kalium und Magnesium sehr wahrscheinlich, daß sie am Aufbau gewisser Verbindungen teilnehmen, die für die Existenz der Pflanze wesentlich sind. Vermutlich enthält z. B. das Protoplasma solche Stoffe. Aber auch andere Substanzen können sie enthalten; so ist z. B. für den Chlorophyllfarbstoff ein beträchtlicher Gehalt an Magnesium nachgewiesen. Man glaubte früher irrtümlicherweise, das Chlorophyll enthalte Eisen, weil in einer Nährlösung ohne Fe die Chloroplasten gelb bleiben (Chlorose S. 205). Wir wissen jetzt, daß das Chlorophyll eisenfrei ist und daß auch nichtgrüne Pflanzen Eisen nötig haben; deshalb gewinnt die Vermutung an Wahrscheinlichkeit, daß das Protoplasma selbst Eisen bedürfe, und daß die Chlorose bei Fe-Mangel die Folge eines kranken Protoplasmas sei.
Kalium, Magnesium und Eisen müssen demnach, da sie in die Pflanzensubstanz übergehen, irgendwo assimiliert werden. Wo und wie das geschieht, ist noch unbekannt. — Etwas anders liegt die Sache beim Kalzium. Es ist bei manchen Pflanzen (Algen) entbehrlich, bei anderen hat es jedenfalls in erster Linie eine schützende Wirkung, insofern als es Giftwirkungen, die von Eisen, Magnesium, Kalium und Natrium, aber auch von Phosphorsäure, Schwefelsäure, Salpetersäure und Salzsäure ausgehen, aufzuhalten vermag. Es ist aber nicht wahrscheinlich, daß auch bei den höheren Pflanzen seine Unentbehrlichkeit durch diese Schutzwirkung allein bedingt ist.
Bei Besprechung der Insektivoren und gewisser grüner Parasiten ist darauf hingewiesen worden, daß diese vielleicht die Aschensubstanzen bereits in organischer Bindung aufnehmen. Sicheres ist aber nicht bekannt.
Wasser. Daß das Wasser unentbehrlich für die Pflanze ist, wissen wir. Wenn es aber ohne chemische Umwandlung als Wasser in den Pflanzenkörper eingelagert wird, werden wir nicht von „Assimilation“ sprechen. So z. B. bei dem Wasser, das die Vakuole füllt, oder das in Plasma und Zellhaut eingelagert ist. Anders wenn das Wasser chemisch gebunden wird. Das findet z. B. notwendigerweise statt, wenn aus Kohlensäure Kohlehydrate entstehen und wahrscheinlich auch anderwärts. In diesen Fällen kann man demnach von einer Assimilation des Wassers mit dem gleichen Recht reden, wie man von Assimilation der Kohlensäure spricht.
IV. Wanderung und Wandlung der Assimilate.
Die Assimilate dienen in erster Linie als Baustoffe zum Aufbau neuer Pflanzensubstanz, also zur Herstellung neuer Zellen; daneben finden sie auch Verwendung als Reserven, als Wanderstoffe, und ein Teil von ihnen wird als Betriebsstoffe verbraucht, während andere in Exkrete oder Sekrete übergeführt werden.
Nur selten findet das Wachstum an den Stellen statt, die assimilatorisch tätig sind; die Kohlensäureassimilation z. B. erfolgt größtenteils in ausgewachsenen Laubblättern, während das Wachstum in der Nähe der Vegetationspunkte, räumlich mehr oder minder weit von den Blättern entfernt, sich vollzieht. Auch zeitlich fällt Organbildung und Assimilationstätigkeit nur teilweise zusammen. Viele Pflanzen haben Zeiten lebhafter Assimilation, die mit geringer Organbildung verbunden ist; und abwechselnd damit dann umgekehrt Zeiten lebhaften Wachstums bei geringer oder gänzlich fehlender Assimilationstätigkeit. Unsere Bäume verlieren im Herbst die Blätter, unsere Stauden die ganzen oberirdischen Organe; beide müssen im Frühjahr erst neue Assimilationsorgane bilden, ehe sie mit erneuter Assimilation beginnen, und zu dieser Organbildung brauchen sie gespeicherte Assimilate. Auch jeder keimende Same lebt zunächst auf Kosten der Assimilate einer älteren Generation. Solche gespeicherte Assimilate nennt man Reservestoffe. Sie können am Ort ihrer Bildung deponiert sein, oder sie können sich an sekundärer Lagerstätte befinden. Den ersten Fall illustriert jedes Laubblatt, das am Abend eines hellen Sommertages mit Stärke überfüllt ist. Den zweiten sehen wir bei Samen, die in einem besonderen Nährgewebe (Endosperm) oder in den Kotyledonen die Reserven beherbergen, doch auch an Vegetationsorganen, die als Reservestoffbehälter schon an ihrer Gestalt kenntlich sind, so die angeschwollenen Blätter der Zwiebeln, die angeschwollenen Stengel (z. B. Kartoffel) oder Wurzeln (z. B. Rübe). Wenn Assimilate in diese Reservestoffbehälter gelangen sollen, so müssen sie wandern, und wenn sie aus diesen Behältern austreten und für Organbildung verwendet werden sollen, so müssen sie abermals wandern. Viele Reservestoffe oder Assimilate sind aber zunächst in einer Form gegeben, die ihnen den Übertritt von Zelle zu Zelle ganz unmöglich macht, sie sind fest; man denke an die Stärke. Andere sind zwar gelöst, aber sie besitzen so große Moleküle, daß sie wenig diffusionsfähig sind (z. B. Inulin). Aus diesen Gründen sieht man die Reservestoffe in der Regel einer Umwandlung („Mobilisierung“) unterworfen, ehe ihre Wanderung beginnt.
A. Mobilisierung der Reservestoffe.
Bei der Mobilisierung der Reservestoffe handelt es sich meist um eine wenig tiefgreifende Veränderung, eine sog. Hydrolyse, d. h. um eine unter Wasseraufnahme vor sich gehende Zerspaltung in kleinere Moleküle. Diese ist bei den drei Grundtypen der Reservestoffe, den Kohlehydraten, den Fetten, den Eiweißkörpern gesondert zu betrachten.
1. Hydrolyse der Kohlehydrate.
Die Stärke ist einer der wichtigsten Reservestoffe der Pflanze. Sie bildet bei Samen sowie bei Knollen und Zwiebeln nicht selten die Hauptmasse der Reserven. In der Kartoffelknolle besteht 20%, im Weizensamen 70% der frischen Substanz aus ihr. Auch im Mark, dem Holzparenchym, den Markstrahlen und der Rinde der Bäume ist sie in reicher Menge enthalten. Chemisch gilt heute die Stärke als ein polymerisiertes Maltoseanhydrid, dem wahrscheinlich die Formel (C12H20O10)n zukommt[188]. Sie ist völlig unlöslich; um wanderungsfähig zu werden, muß sie abgebaut worden. In unseren Fabriken geschieht das durch Behandlung mit Säuren. Der im Handel befindliche Traubenzucker wird durch Behandlung von Kartoffelstärke mit Schwefelsäure gewonnen. Entsprechend der Formel
(C12H20O10)n + 2n H2O = n C6H12O6
wird das Stärkemolekül unter Wasseraufnahme in n Glykosemoleküle zerspalten. In der Pflanze geht aber die Hydrolyse unter dem Einfluß eines besonderen Stoffes, der Diastase, vor sich. Es ist das eine Substanz, die man mit Wasser oder Glyzerin aus der Pflanze herauslösen kann. Durch Zusatz von Alkohol wird sie aus dem Extrakt ausgefällt und kann nach abermaliger Lösung wieder die gleiche Wirkung auf Stärke ausüben wie zuerst. Nach Erhitzung wird sie aber unwirksam. WILLSTÄTTER hat durch Adsorption Enzyme, darunter auch eine Diastase, weitgehend gereinigt und hat gezeigt, daß sie weder zu den Kohlehydraten noch zu den Proteinen gehört. Von anderen Enzymen unterschied sich dieses Präparat nur durch seine Wirkung auf Stärke, chemisch aber gar nicht; nach dem Erhitzen war überhaupt jeder Unterschied verschwunden. So birgt die Frage nach der chemischen Natur der Diastase und anderer Enzyme noch viele Rätsel[189].
Diese Diastase hat nun eine ganz ähnliche Wirkung auf Stärke wie die Schwefelsäure, aber sie baut freilich die Stärke nicht so vollständig ab wie die Säure, sondern sie macht nach Bildung des Disaccharids Maltose halt. Man bezeichnet die Schwefelsäure und ebenso die Diastase als einen Katalysator. Katalysatoren aber nennt man Stoffe, die die Geschwindigkeit einer freiwillig verlaufenden chemischen Reaktion ändern. In erster Linie handelt es sich um die Beschleunigung von Reaktionen. In unseren Laboratorien bedienen wir uns zur Beschleunigung von Reaktionen vor allem einer erhöhten Temperatur; dieses Mittel kann der Organismus nicht weitgehend verwenden, weil sein Leben an enge Temperaturgrenzen gebunden ist. In zweiter Linie beschleunigen wir Reaktionen durch anorganische Katalysatoren. Da viele von diesen, z. B. die oben verwendete Schwefelsäure, das Protoplasma schädigen, so begreifen wir, daß im Organismus besondere, unschädliche Katalysatoren auftreten. Diese nennt man Enzyme[190] und findet sie bei Pflanzen wie bei Tieren in gleicher Weise vor. Während nun viele anorganische Katalysatoren auf sehr verschiedenartige chemische Vorgänge Einfluß haben, sind die organischen Katalysatoren von ganz spezifischer Wirkungsweise; Diastase z. B. wirkt nur auf Stärke ein. Da der Katalysator nicht oder nicht dauernd in die Reaktion eingeht, so kann eine kleine Menge von ihm eine sehr große Masse hydrolysieren, wenn für dauernde Abfuhr der Reaktionsprodukte gesorgt ist.
Die Diastase findet sich in zahlreichen Pflanzenorganen, insbesondere solchen, die viel Stärke enthalten, z. B. in Laubblättern, in keimenden Samen. Der Diastasegehalt eines Organs ist aber kein konstanter, vielmehr wird er nach Bedürfnis der Pflanze reguliert, auch kann die Diastase durch Bildung von anderen Enzymen in ihrer Wirkung gehemmt werden (Antienzyme). Hier treffen wir also wieder einen der vielen Regulationsvorgänge, die für den Organismus so charakteristisch sind.
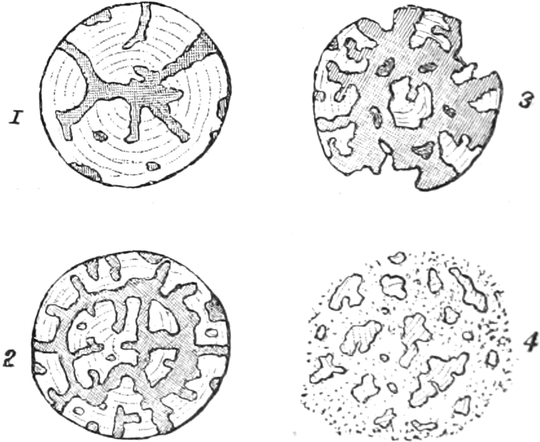
Fig. 252. Korrodierte Stärkekörner aus keimender Gerste. 1, 2, 3, 4 aufeinanderfolgende Stadien der Auflösung, die sich in einem Samen nebeneinander vorfinden. Nach NOLL.
In der Pflanze wirkt die Diastase auf die Stärkekörner; diese werden unter ihrem Einfluß korrodiert, sie schmelzen von außen her ab, doch geht dieses Abschmelzen meist etwas unregelmäßig vor sich, so daß die Körner andere Gestalt annehmen. An einzelnen Punkten frißt die Diastase rascher in die Tiefe und zerlegt so das Korn unter Benutzung präexistierender Spalten und Kanäle in kleinere Stücke, die dann weiter abschmelzen (Fig. 252). Außerhalb der Pflanzen kann man die Diastasewirkung am besten an einem dünnen Stärkekleister demonstrieren, der nach Zusatz von Diastase im Laufe von Minuten oder Viertelstunden in Zucker übergeht. Dementsprechend bemerkt man an Proben, die man mit Jod versetzt, daß die anfangs bläuliche Färbung einer weinroten, endlich einer gelben Farbe weicht.
Auch Zellulose, die chemisch der Stärke sehr nahe steht[188], tritt häufig als Reservestoff auf. In dem Endosperm vieler Samen, besonders auffallend bei den Palmen (z. B. Elfenbeinpalme), sieht man die Zellwände außerordentlich stark verdickt. Die Verdickungsschichten werden bei der Keimung aufgelöst. Auch hier ist ein Enzym tätig (die sog. Zytase), das nun aber freilich nicht jede beliebige Zellulose anzugreifen vermag. Gerade typische Zellulose (S. 31) wird nicht von ihm angegriffen, wohl aber von einem anderen Enzym, der Zellulase.
Das Inulin, das namentlich bei den Kompositen und Campanulaceen verbreitet ist, geht in ähnlicher Weise aus Fruktose hervor wie die Stärke und die Zellulose aus Maltose[188]. Im Gegensatz zu diesen beiden Kohlehydraten kommt es stets nur in gelöstem Zustand in den Pflanzen vor. Trotzdem ist es nicht ohne weiteres wanderungsfähig und wird bei der Keimung durch ein Enzym in Fruktose abgebaut.
Auch Rohrzucker findet sich sehr häufig als Reservestoff und wird in großer Menge z. B. im Zuckerrohr und in der Zuckerrübe gespeichert. Er wird durch das weit verbreitete Enzym „Invertin“ in Dextrose und Lävulose gespalten.
2. Die Fette.
Wenn wir auch die unter den Reservekohlehydraten erwähnten Körper nicht aus Dextrose bzw. Lävulose herstellen können, so begreifen wir doch, daß es der Pflanze ebenso leicht wird, sie aufzubauen wie abzubauen. Viel schwieriger ist es zu verstehen, wie die Pflanze Fette (Glyzerinester verschiedener Fettsäuren vgl. S. 25) aus Kohlehydraten zu bilden vermag. Fette fehlen wohl keinem lebenden Protoplasma; es wurde ja schon mehrfach auf die allgemeine Verbreitung des Lezithins hingewiesen, das ein Fettderivat ist. In besonders großen Mengen aber treten die Fette als Reservestoffe auf. In den assimilierenden Laubblättern freilich nicht, wohl aber in vielen reifen Samen, wo sie an Stelle verschwindender Kohlehydrate treten. Bei der Keimung werden sie durch das Enzym Lipase in Fettsäure und Glyzerin zerspalten. Die Fettsäure als solche kann die wasserdurchtränkte Zellhaut schon leichter durchwandern als das Fett, doch dürfte sie in der Regel keine allzu großen Strecken in der Pflanze zurücklegen, vielmehr rasch wieder in Kohlehydrate verwandelt werden. — Fettes Öl findet sich außerdem im Fleisch (Perikarp) mancher Früchte, z. B. bei der Ölpalme und Olive, und wird dann nicht mehr in den Stoffwechsel der Pflanze hereingezogen.
3. Die Eiweißkörper.
Das Eiweiß findet sich in den Reservestoffbehältern teils gelöst, teils in kristallinischer oder amorpher Form. Die Kristalle kommen frei im Plasma, Zellkern oder den Chromatophoren vor, in den Samen aber besonders in den Aleuronkörnern, wo sie von den Globoiden (vgl. S. 26) begleitet werden.
Die hydrolytischen Abbauprodukte der Eiweißkörper sind vor allem Aminosäuren, deren weite Verbreitung in der Pflanze schon erwähnt wurde. Namentlich wenn eiweißreiche Samen, wie z. B. Rizinus. Pinus u. v. a. keimen, wird man die reichlich auftretenden Aminosäuren als Abbauprodukte des Eiweißes betrachten dürfen. Aminosäuren, die sich an anderen Stellen vorfinden, können ja immer auch beim Eiweißaufbau entstanden sein. Das Eiweißmolekül zerfällt nicht sofort und nicht ausschließlich in Aminosäuren. Der Abbau erfolgt durch allmähliche Zertrümmerung des Riesenmoleküls, wobei zunächst Albumosen auftreten, dann Peptone und dann erst Aminosäuren. Neben letzteren treten Ammoniak, ferner auch schwefelhaltige und eventuell phosphorhaltige Spaltungsprodukte und wohl auch allgemein Kohlehydratgruppen auf.
Dieser hydrolytische Abbau des Eiweißes vollzieht sich unter dem Einfluß von „proteolytischen“ Enzymen (Proteasen), die aller Wahrscheinlichkeit nach große Ähnlichkeit mit den entsprechenden Enzymen des Tierkörpers haben. Demnach hätten wir zu unterscheiden:
Pepsine, die das Eiweißmolekül nur wenig tief, bis zu Albumosen und Peptonen abbauen.
Erepsine, die das Pepton in Aminosäuren überführen.
Trypsine, die Eiweiß direkt bis zu den Aminosäuren abbauen.
Desamidasen, die aus Aminosäuren Ammoniak abspalten.
Die Abbauprodukte des Eiweißes erfahren in der Pflanze rasch Veränderungen; demnach ist das Gemisch stickstoffhaltiger organischer Verbindungen, das man bei einer im Dunkeln gehaltenen Pflanze erhält, nicht identisch mit den durch Hydrolyse von Eiweiß außerhalb der Pflanze entstehenden Spaltungsprodukten. Es folgen nämlich in der Pflanze auf die primäre Spaltung sofort wieder Synthesen, die z. B. zur Bildung von Amiden führen. Unter den Amiden steht an Verbreitung das Asparagin obenan. Sehr reichlich findet es sich in Gramineen und Leguminosen; im Liter Preßsaft von Bohnenkeimlingen z. B. ist es bis zu 15 g enthalten. Bei Cruciferen und Cucurbitaceen wird es durch das Glutamin ersetzt, während in den Koniferen einer Diaminosäure, dem Arginin, die entsprechende Rolle zuzufallen scheint. Bei solchen Synthesen wird vor allem die Anhäufung des giftigen Ammoniaks vermieden; die Amidbildung in der Pflanze hat eine ähnliche Bedeutung wie im Tierkörper die Harnstoffbildung: Asparagin und Harnstoff sind also entgiftetes Ammoniak. Die Entstehung von Asparagin ist aber an die Gegenwart von unoxydierten C-Atomen (also z. B. Kohlehydrat) gebunden, während Harnstoff aus NH3 und oxydiertem Kohlenstoff, also auch im Hungerzustande, gebildet werden kann[191]. Noch weitergehend sind die Synthesen am Licht, wo aus den Eiweißspaltprodukten sofort wieder Eiweiß gebildet wird.
B. Wanderung der mobilisierten Reservestoffe.
Wenn die Reservestoffe durch geeignete Enzyme in lösliche Form gebracht oder in Substanzen von kleinerem Molekulargewicht verwandelt sind, dann können sie wandern; sie sind „mobilisiert“. Bei diesen Bewegungen muß wie bei anderen Stoffwanderungen vor allem ein Diffusionsgefälle gegeben sein und dauernd unterhalten werden. Das geschieht dadurch, daß in den Zellen, die sich an die Reservestoffbehälter in größerer oder kleinerer Entfernung anschließen, ein lebhaftes Wachstum einsetzt. Solange dieses andauert, wird jedes zutretende Molekül rasch verwandelt, Zucker z. B. in Zellulose umgebildet, und dadurch Platz für nachrückende Moleküle geschaffen. Doch auch in nicht wachsenden Organen, z. B. Kotyledonen, Endospermen, stellt die Pflanze ein Diffusionsgefälle her, z. B. dadurch, daß die Zellen, die das Ziel der Wanderung sind, ein stärkeres Kondensationsvermögen für Zucker (Stärkebildung) haben als andere. Man kann das Diffusionsgefälle auch künstlich herstellen, wenn man Reservestoffbehälter unter geeigneten Vorsichtsmaßregeln einseitig mit großen Wassermassen in Berührung bringt. Auf diese Weise ist es z. B. gelungen, künstlich eine Entleerung von Samen, Zwiebeln usw. zu erzielen.
Da jede Diffusionsbewegung nur sehr langsam sich vollzieht, so muß bei Stofftransporten auf größere Entfernung eine Unterstützung durch Massenbewegung hinzutreten. So werden z. B. im Frühjahr die Reservestoffe, die im Holzkörper unserer Bäume deponiert sind, mit dem aufsteigenden Wasserstrom in den Gefäßen fortgerissen. Im Inhalt der Gefäße läßt sich zu dieser Zeit reichlich Glykose nachweisen. Umgekehrt wird sich der Strom von mobilisierten Reserven, der von den Laubblättern abwärts wandert, mindestens zum Teil in den Siebröhren bewegen. Im einzelnen bedarf hier aber noch vieles der Aufklärung[192].
Auch eine andere Stoffwanderung aus dem Laubblatt hat man beobachtet. Kurz vor dem Laubfall „vergilben“ die Blätter: während die grünen Farbstoffe des Chlorophylls gelöst und weggeführt werden, bleiben die gelben in den Chloroplasten zurück. Es werden dann wenigstens manche, keineswegs alle, der im Blatt enthaltenen nützlichen Stoffe in den Stengel übergeführt und bleiben so der Pflanze erhalten. Die Zellwände, ein protoplasmatischer Wandbelag und osmotisch wirksame Vakuolenstoffe bleiben, das Blatt fällt in turgeszentem Zustand ab; Kalium, Phosphorsäure und Stickstoff aber werden in den Stamm übergeführt[193].
C. Weitere Stoffmetamorphosen.
Regeneration der Reservestoffe. Früher oder später werden die durch Enzyme mobilisierten Reservestoffe wieder in feste oder hochmolekulare Stoffe zurückverwandelt. Dies geschieht unter allen Umständen am Ende ihrer Wanderung, einerlei, ob sie da wieder als Reservestoffe deponiert oder als Baustoffe verwendet werden. So kann z. B. im Blatt gebildete Glykose in einen Samen oder in eine Knolle wandern und dort zu Stärke oder zu Zellhaut transformiert werden. Bei Wanderung auf größere Strecken findet aber nicht nur am Endziele, sondern auch unterwegs fortwährend Reservestoffbildung statt. Das läßt sich besonders gut für Stärke zeigen. Auf den Bahnen der Zuckerwanderung kann in jeder Zelle sog. transitorische Stärke gebildet werden. Durch diese vorübergehende Stärkebildung wird das Konzentrationsgefälle unterhalten, das für dauernde Bewegung notwendig ist.
Andere Stoffwechselprodukte[194]. Mit den bisher genannten organischen Stoffen ist nur ein ganz kleiner Teil der „Pflanzenstoffe“ erwähnt. Es mag hier genügen, an die organischen Säuren, die Gerbstoffe, die Glykoside, die Alkaloide, Farbstoffe, ätherischen Öle, Harze, Gummiharze und Federharze (Kautschuk und Guttapercha) zu erinnern, um auf die Legion von Stoffen hinzuweisen, die aus den Assimilaten gebildet werden. Von diesen werden nur die organischen Säuren bei späterer Gelegenheit noch Besprechung finden (S. 235); alle anderen sind weder nach ihrer Entstehung noch nach ihrer physiologischen Bedeutung genügend erforscht. Bekannt ist nur, daß sie nach ihrer Bildung in der Regel keine weitere Verwendung mehr finden. Vermutlich handelt es sich also um Nebenprodukte des pflanzlichen Stoffwechsels.
Sie brauchen nicht nutzlos zu sein. In der Tat nimmt man für manche bittere oder giftige Stoffe an, daß sie Tiere vom Genuß der Pflanze abhalten; auch manche Farbstoffe sollen nützlich werden dadurch, daß sie Tiere anlocken, die Pollen, Samen oder Früchte verbreiten, oder daß sie schädliche Tiere abschrecken (Schreckfarben). Harze und Federharze endlich können, wenn sie austreten und erhärten, einen Wundverschluß liefern.
Das Reifen fleischiger Früchte. Eine sehr auffallende Umwandlung von Stoffen findet auch bei der Reife fleischiger Früchte statt. Auf einen freilich seltenen Fall (Fettbildung) ist schon oben hingewiesen worden. Viel häufiger ist die Umwandlung von Stärke in Zucker sowie das Verschwinden der organischen Säuren und der Gerbstoffe. Die Früchte hören also auf, sauer oder bitter zu schmecken, sie werden süß. In diesem Zustand werden sie dann zur Nahrung für Tiere, die die Samen verbreiten. Die ganze Bedeutung der chemischen Vorgänge liegt hier also auf ökologischem Gebiet.
V. Atmung und Gärung.
Bei der höheren Pflanze wird niemals die ganze Menge der im Assimilationsprozeß erzeugten organischen Substanzen zu Bau- und Reservezwecken verwendet; stets wird ein Teil davon abgebaut, in anorganische Substanz rückverwandelt. Neben der Assimilation existiert immer auch Dissimilation. Die Bedeutung dieses Prozesses, der im allgemeinen unter Sauerstoffaufnahme vor sich geht und als Atmung bezeichnet wird, liegt nicht in dem Auftreten gewisser Stoffe, sondern in dem Freiwerden von Energie, die für die Pflanze unentbehrlich ist. Bei gewissen niederen Pflanzen erfolgt aber der Gewinn an freier Energie unter Umständen in anderer Weise. Hier werden meist organische Substanzen aus dem Substrat aufgenommen und (ohne erst weiter assimiliert zu werden) sofort wieder abgebaut. Im einzelnen können bei diesem Abbau Oxydationen, Reduktionen oder Spaltungen erfolgen; alle diese Prozesse werden als Gärungen zusammengefaßt. Andere niedere Organismen vermögen die bei der Oxydation gewisser anorganischer Stoffe freiwerdende Energie auszunützen. Diese verschiedenen Arten des Energiegewinnes sind durch Übergänge verknüpft.
Schienen früher die einzelnen Formen der Dissimilation zwar biologisch gleichwertig aber chemisch außerordentlich verschieden, so bricht sich nach den Ausführungen WIELANDs mehr und mehr die Anschauung Bahn, daß sie auch chemisch im Prinzip immer wieder auf die gleichen Vorgänge hinauslaufen. Denn es hat sich gezeigt, daß nicht dem Sauerstoff die aktive Rolle zukommt, die man ihm früher zuschrieb, sondern daß überall der Wasserstoff primär eingreift, daß Hydrierungen und Dehydrierungen zuerst einsetzen und daß die Rolle des Sauerstoffs auch von anderen Stoffen übernommen werden kann[195].
A. Atmung.
Unter Atmung in ihrer typischen Form versteht man die Oxydation organischer Substanz zu Kohlensäure und Wasser; dazu ist die Aufnahme von Sauerstoff aus der Umgebung nötig (vgl. S. 210).
Die Atmung der Pflanzen bietet sich dem Beobachter nicht so augenfällig dar wie die der höheren Tiere. Wie sich die Ernährung der grünen Pflanzen nur durch das eigens angestellte Experiment feststellen ließ, so bedurfte es gleichfalls besonderer Versuche, um zu erkennen, daß auch die Pflanzen atmen müssen, um zu leben, daß sie ganz wie Tiere Sauerstoff aufnehmen und Kohlensäure abgeben. SAUSSURE und DUTROCHET haben dies in den Jahren 1822 bis 1837 durch eingehende Untersuchungen bewiesen. Später leugnete man freilich die Existenz der Atmung bei den Pflanzen wieder unter Hinweis auf die Kohlensäurezersetzung und Sauerstoffabscheidung bei der Assimilation; man konnte sich nicht vorstellen, daß beide Prozesse gleichzeitig stattfinden könnten. Erst SACHS hat dann der richtigen Anschauung zum Sieg verholfen. Assimilation und Atmung sind zwei Lebensvorgänge, die ganz unabhängig voneinander in der Pflanze bestehen. Während nur die grünen Pflanzenteile, und zwar nur im Licht, bei der Assimilation Kohlensäure zerlegen und Sauerstoff ausscheiden, atmen alle Organe der höheren Pflanzen — genau wie die der Tiere — Tag und Nacht Sauerstoff ein und Kohlensäure aus. Wird bei der Assimilation organische Substanz gewonnen, so geht umgekehrt bei der Atmung solche verloren. Wenn grüne Pflanzen im Licht einen bedeutenden Überschuß organischer Substanz gewinnen, so verdanken sie diesen ausschließlich dem Umstande, daß die zeitweilige Produktion durch die Assimilationstätigkeit der Chlorophyllkörper die Verluste durch die ständige Atmung aller Organe übertrifft. So genügt nach BOUSSINGAULTs Schätzungen beim Lorbeer 1 Stunde Assimilation, um das Material für 30 Stunden Atmung zu beschaffen. Unterdrückt man die Assimilation, läßt man die Pflanze im Dunkeln verweilen, so verliert sie ganz beträchtlich an Trockengewicht.
Die Pflanzen produzieren in 24 Stunden durchschnittlich das 5–10fache ihres Volumens an Kohlensäure. Bei Schattenpflanzen ist die Produktion meist auf das 2fache Volumen beschränkt; die bekannte Zimmerpflanze Aspidistra bringt es aber nur auf die Hälfte ihres Eigenvolumens und kann sich eben deshalb auch mit der geringen Assimilation in sehr gedämpften Lichte begnügen.
Zum Nachweis der Atmung kann man entweder die Aufnahme von Sauerstoff oder die Abgabe von Kohlensäure durch die Pflanze benutzen. Läßt man eine Hand voll gequollener Samen am Grunde eines zylindrischen Glasgefäßes keimen und hält dessen Glasstöpsel einen Tag lang verschlossen, so ist der Sauerstoff, der sich zuvor in dem Gefäß befand, von den Keimlingen aufgezehrt; eine Kerze erlischt, wenn man sie in den Raum einführt. Eine andere Versuchsanordnung wird durch Fig. 253 illustriert. In dem umgekehrten Kolben befinden sich Keimpflanzen, Blüten oder Hutpilze; durch den Wattepfropfen W werden sie am Herabfallen verhindert. Die Öffnung des Kolbens ist durch Quecksilber gesperrt, im Hals befindet sich Kalilauge K. Die auftretende Kohlensäure wird dann von der Kalilauge absorbiert und das Quecksilber steigt. Bei quantitativer Ausführung dieses Versuches ergibt sich, daß ein Fünftel des Luftvolumens verschwindet, daß also der ganze Sauerstoff der Luft aufgenommen wurde. Da sich aber ein abgeschlossenes Luftvolumen bei der Atmung von Pflanzen (wenn keine Kalilauge zugegen ist) nicht ändert, muß für jedes Volumen absorbierten Sauerstoffes ein gleichgroßes Volumen CO2 gebildet werden; das Verhältnis der ausgeschiedenen Kohlensäure zum aufgenommenen Sauerstoff, der Atmungsquotient, ist gleich eins (CO2O2 = 1). Da Glykose das gewöhnliche Material der Atmung ist, so erfolgt diese nach der Formel:
C6H12O6 + 6 O2 = 6 CO2 + 6 H2O.
Bei diesem Prozeß, der genau entgegengesetzt der CO2-Assimilation verläuft, muß also auch Wasser auftreten, das freilich nicht so bequem wie der Verbrauch von Sauerstoff und die Produktion von Kohlensäure nachzuweisen ist. Quantitative Bestimmungen des Trockengewichtsverlustes und der Kohlensäure zeigen, daß letztere nicht ausreicht, den ersteren zu erklären; ein Teil der Trockensubstanz muß also zu Wasser geworden sein.
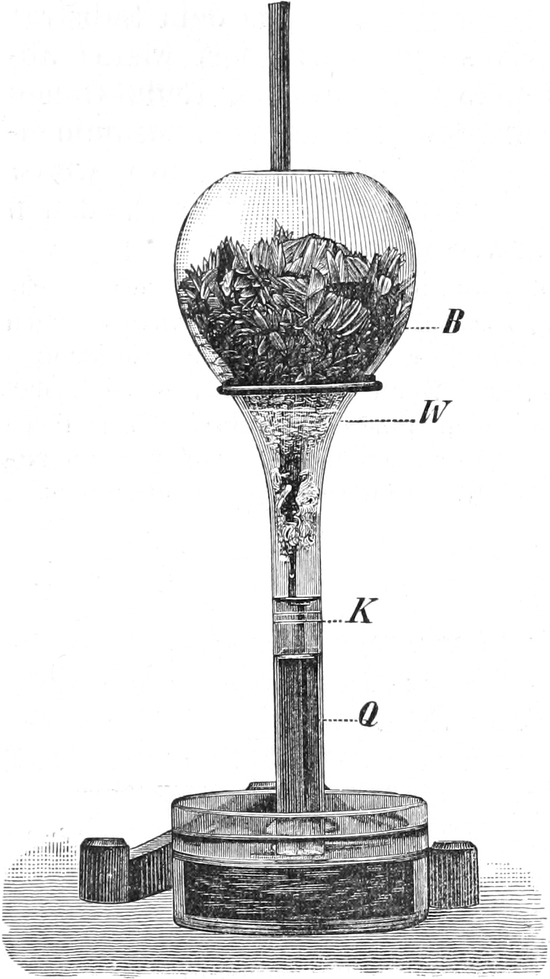
Fig. 253. Atmungsversuch. Der bauchige Teil des Glasgefäßes B ist mit Wucherblumen gefüllt. Die durch ihre Atmung erzeugte Kohlensäure wird von der Kalilauge K absorbiert und die Absorption angezeigt durch das Steigen des Quecksilbers Q in der Röhre. Nach NOLL.
Aber nicht unter allen Umständen bleibt ein abgeschlossenes Gasvolumen unter der Atmungstätigkeit von Pflanzen unverändert, nicht immer ist die auftretende Kohlensäure volumgleich mit dem verschwindenden Sauerstoff. Kleine Abweichungen von diesem Verhältnis findet man wohl bei allen Pflanzen, beträchtliche z. B. beim Keimen fetthaltiger Samen und bei Blättern gewisser Sukkulenten (Crassulaceen). Das hängt damit zusammen, daß bei diesen Samen Fette veratmet werden, die viel sauerstoffärmer sind als die Kohlehydrate, und daß bei den Crassulaceen aus Kohlehydraten nicht Kohlensäure und Wasser, sondern bestimmte organische Säuren entstehen. Auch bei anderen Pflanzen treten solche Säuren auf, wenn auch nicht in so großer Menge. Sie dürften zum größten Teil beim Atmungsprozeß entstehen, doch können sie wohl auch im aufbauenden Stoffwechsel erzeugt werden. Vor allem ist da die Oxalsäure zu nennen, deren weite Verbreitung in Form von oxalsaurem Kalk ja bekannt ist. Ihre Bildung geht in dem Maße weiter, als ihre Neutralisation durch Kalk ermöglicht wird. Ohne solche Neutralisation aber wird ihre Entstehung eingeschränkt. Selbst in oxalatfreien Pflanzen kommt es zu einer vorübergehenden Bildung von Oxalsäure, die aber dann rasch durch ein oxydierendes Enzym weiter oxydiert wird.
Bei der Keimung fettreicher Samen wird sehr viel mehr Sauerstoff aufgenommen, als Kohlensäure abgegeben wird; oft so viel, daß in den ersten Tagen im Dunkeln trotz bestehender Atmung eine Zunahme des Trockengewichts erfolgt. Der Atmungsquotient ist also kleiner als 1. Die Hauptmenge dieses Sauerstoffes wird zur Umwandlung der sauerstoffarmen Fette in Kohlehydrate verbraucht; nur ein kleiner Teil dient zur Atmung.
Bei den Crassulaceen ist die Oxydation der Kohlehydrate eine unvollständige; nur ein Teil ihres Kohlenstoffs wird in CO2 übergeführt, der übrige zur Bildung organischer Säuren verwandt. Deshalb erscheint weniger Kohlensäure, als man nach der Sauerstoffaufnahme erwarten sollte. Der Atmungsquotient ist kleiner als 1. — Dieser eigenartige Atmungsprozeß, der mit einer schon am Geschmack wahrnehmbaren Säurebildung im Zellsaft verbunden ist, hat für sukkulente Pflanzen eine große ökologische Bedeutung. Die auftretenden Säuren (Äpfelsäure und Oxalsäure vor allem) geben nämlich am Licht Kohlensäure ab. Diese kann dann sofort im Assimilationsprozeß wieder Verwertung finden, während bei der typischen Atmung wenigstens alle in der Nacht entstandene CO2 entweicht und für die betreffende Pflanze verloren geht. Die Sukkulenten sparen also mit ihrem C-Vorrat, und das dürfte damit zusammenhängen, daß sie sich nicht so leicht mit Kohlensäure aus der Luft versehen können wie gewöhnliche Pflanzen. (Verringerung des Gasaustausches wegen Einschränkung der Transpiration.)
Wie gesagt, ist die Atmung bei den höheren Pflanzen allgemein verbreitet; sie findet sich nicht nur bei Pflanzenteilen, die chlorophyllfrei sind (vgl. die Versuche S. 234), sondern sie läßt sich auch in chlorophyllhaltigen Zellen nachweisen. Hier wird sie freilich am Licht durch den quantitativ sehr überwiegenden Assimilationsprozeß überdeckt; sie äußert sich also nur in einer Verminderung der Assimilationsprodukte. Dämpft man das Licht mehr und mehr ab, so verschwindet die Assimilation schließlich ganz, und die Atmung zeigt sich in voller Klarheit.
Wenn demnach Atmung in jeder einzelnen Zelle stattfindet, so ist sie in verschiedenen Organen und unter verschiedenen äußeren Bedingungen doch ihrer Intensität nach außerordentlich verschieden. Lebhaft wachsende Pflanzenteile, junge Pilze, keimende Samen, Blütenknospen und vor allem die Infloreszenzen von Araceen und Palmen zeigen eine sehr energische Atmungstätigkeit. Diese übertrifft bei manchen Bakterien und Pilzen nicht unbeträchtlich die des Menschen, wenn man sie an gleichen Gewichtsmengen Körpersubstanz mißt. In der Mehrzahl der Fälle, insbesondere bei Pflanzenteilen, die ganz oder überwiegend aus ausgewachsenen Geweben bestehen, ist aber der Sauerstoffkonsum und entsprechend die Kohlensäureproduktion ganz bedeutend geringer als bei den warmblütigen Tieren. — Unter den äußeren Einflüssen, die von Wichtigkeit für die Intensität der Atmung sind, müssen vor allem die Temperatur und der Sauerstoff genannt werden. Wie auf alle Lebensvorgänge, so wirkt auch auf die Atmung eine Zunahme der Temperatur zunächst beschleunigend. Die Produktion der Kohlensäure wird genau in der gleichen Weise wie viele andere chemische Vorgänge durch eine Temperatursteigerung um 10° ungefähr verdoppelt bis verdreifacht. Bald folgt aber auch hier mit weiter steigender Temperatur eine Abnahme der Atmung. Im Gegensatz zu anderen Erscheinungen ist der abfallende Ast der Kurve bei der Atmung ganz außerordentlich steil, so daß Optimum und Maximum fast zusammenfallen.
Man pflegt die Atmung als einen Verbrennungsprozeß zu bezeichnen. Wenn das richtig ist, sollte man glauben, daß die Menge des zur Verfügung stehenden Sauerstoffes von fundamentaler Wichtigkeit sei; insbesondere sollte man erwarten, daß die Atmung in reinem Sauerstoff enorm gesteigert, im sauerstoffreien Raum völlig sistiert werde. Keines von beiden trifft zu. In reinem Sauerstoff ist die Atmung nicht wesentlich vermehrt, und erst bei einem Sauerstoffdruck von 2–3 Atmosphären macht sich anfänglich eine Zunahme der Atmung bemerkbar, der aber bald eine als Absterbeerscheinung zu deutende Abnahme folgt. — Sehr viel auffallender ist die Tatsache, daß Pflanzen ohne Gegenwart von Sauerstoff fortfahren, Kohlensäure zu produzieren. Hier kann natürlich von einem „Verbrennungsprozeß“ nicht mehr die Rede sein; man spricht von „intramolekularer Atmung“[196], weil die auftretende Kohlensäure ihre Entstehung einer Umlagerung von Atomen im Molekül des Atmungsmateriales (Zucker) verdankt. Dabei zerfällt das Zuckermolekül und bildet neben Kohlensäure stets andere, nämlich stark reduzierte Substanzen, manchmal z. B. Alkohol, nach der Formel:
C6H12O6 = 2 C2H6O + 2 CO2.
Nimmt man statt dieser empirischen die Strukturformeln:
COH · CHOH · CHOH · CHOH · CHOH · CH2OH = CO2 + CH3 · CH2OH + CH3CH2OH + CO2,
so sieht man, daß das Zuckermolekül in vier Stücke zerbricht, von denen zwei sauerstoffärmer, die beiden anderen sauerstoffreicher sind als die Molekülgruppen, aus denen sie hervorgehen. Es entziehen also bei dieser Art von Atmung gewisse Molekülgruppen anderen den gebundenen Sauerstoff.
Man nimmt an, daß Sauerstoffatmung und intramolekulare Atmung der Ausdruck ein und derselben Befähigung der Pflanze sind, mit anderen Worten, daß die Sauerstoffatmung bei Entziehung des Sauerstoffes in eine intramolekulare Atmung übergeht. Wenn das zutrifft, dann wird man sagen müssen, daß das Wesentliche bei der Atmung gar nicht in einer Oxydation besteht, sondern in einer Veränderung des Atemmaterials, bei der Produkte entstehen, die leicht Sauerstoff aufnehmen können. Die Materialien, die in der Pflanze veratmet werden, Kohlehydrate und Eiweiß, werden bei gewöhnlicher Temperatur nicht leicht oxydiert. Fette freilich, die auch als Atmungsmaterial dienen können, sind oxydabel; allein von ihnen wissen wir, daß sie in der Pflanze zuerst in Kohlehydrate verwandelt werden, ehe sie der Atmung verfallen. Die Pflanze muß also über Mittel besonderer Art verfügen, um die Oxydation ihrer Reservestoffe zu bewerkstelligen.
Die Vorstellungen, die man sich über den Chemismus der Atmung machen kann, haben sich in den letzten Jahren, vor allem durch die chemischen Studien WIELANDs und die physiologischen PALLADINs sehr geklärt[197]. Man darf jetzt annehmen, daß bei der Verbrennung des Atmungsmaterials der primäre Vorgang nicht etwa in einer Aktivierung des Sauerstoffs, im Auftreten von Ozon besteht, denn sonst müßten zahllose Stoffe in der Zelle verbrannt werden, und es könnte nicht eine „auswählende“ Verbrennung bestehen derart, daß leicht oxydable Stoffe verschont bleiben, schwer oxydable spielend oxydiert werden. Vielmehr besteht der primäre Vorgang in einer Anlagerung von Wasser an das Atmungsmaterial, z. B. an den Zucker. Hierauf erst findet eine Oxydation statt, und zwar in Form von Wasserstoffentziehung (Dehydrierung), wobei gleichzeitig CO2 frei wird. WIELAND konnte nämlich zeigen, daß die Glykose in Gegenwart von Palladiumschwarz als Katalysator auch unter Sauerstoffabschluß bei niederen Temperaturen H und CO2 abgibt; der Wasserstoff wird an das Palladiumschwarz gebunden, so daß sich der Prozeß mit zunehmender Wasserstoffsättigung des Palladiums abschwächt, jedoch weitergeht bei Gegenwart eines Wasserstoffakzeptors. Als solcher kann bei Luftabschluß z. B. Methylenblau unter Bildung seiner Leukoverbindung dienen, während bei Luftzutritt der Sauerstoff dessen Rolle übernimmt, wobei dann Wasser entsteht.
In den höheren Pflanzen scheint nun das Palladiumschwarz durch gewisse Enzyme ersetzt zu sein, die den Wasserstoff von der Additionsverbindung des Zuckers mit Wasser auf leicht reduzierbare Substanzen übertragen. Diese H-Akzeptoren hat PALLADIN „Atmungspigmente“ genannt. Von den Atmungspigmenten aber geht dann der Wasserstoff unter Einwirkung sog. Oxydasen an den Luftsauerstoff über, und es entsteht Wasser. Die Oxydasen, die auch Enzyme sind, übertragen also den Luftsauerstoff nicht auf den Zucker, sondern auf den Wasserstoff, der auf dem beschriebenen Wege aus dem Zucker frei gemacht wird. Sie sind in den Pflanzen ganz allgemein nachgewiesen.
Im Schema würde sich also die Zuckerveratmung so vollziehen:
1.
C6H12O6 + 6 H2O
=
6 CO2 + 24 H
2.
24 H + 6 O2
=
12 H2O
C6H12O6 + 6 O2
=
6 CO2 + 6 H2O
Fehlt der freie Sauerstoff, so muß natürlich die Gleichung einen anderen Verlauf nehmen. Entweder wird, wie bei gewissen Gärungen (S. 238), der Wasserstoff als solcher ausgeschieden, oder er wird zur Bildung weniger hoch oxydierter Verbrennungsprodukte, z. B. Alkohol, verwendet. Aller Wahrscheinlichkeit nach entstehen bei der Atmung aus dem Zucker zunächst die Stoffe, von denen unten bei der alkoholischen Gärung zu reden sein wird.
Auf den ersten Blick erscheint die Atmung als ein widersinniger Prozeß; es wird ja doch organische Substanz, die im Assimilationsprozeß aufgebaut wurde, wieder zerstört. Verständlich wird die Atmung erst, wenn man von ihrer stofflichen Seite ganz absieht und die energetische ins Auge faßt. In der Tat kommt es bei der Atmung für die Pflanze gar nicht in Betracht, daß CO2 und Wasser entstehen; wichtig ist einzig und allein, daß freie Energie auftritt. Solche muß beim Abbau z. B. von Kohlehydraten entstehen, da ja zu deren Aufbau, wie wir sahen, ein Energieaufwand nötig ist; und diese frei werdende Energie ist für die Pflanze unentbehrlich, sie liefert die Betriebskraft für zahlreiche Lebenserscheinungen. Dementsprechend steht bald nach der Entziehung des Sauerstoffs die Protoplasmabewegung still; das Wachstum und die Reizbewegungen werden eingestellt. Alle diese Lebensäußerungen aber beginnen wieder, wenn nach nicht zu langer Zeit Sauerstoff von neuem der Pflanze zur Verfügung gestellt wird. Man kann sich wohl vorstellen, daß der Organismus Einrichtungen besäße, mit deren Hilfe er die ihm direkt von außen zufließende Energie, Licht und Wärme, als Betriebsenergie verwenden könnte. Allein tatsächlich sehen wir, daß er es vorzieht, die Sonnenenergie in Form von chemischer Energie zu speichern. Das hat für die Pflanze vor allem den einen großen Vorzug, daß die gespeicherte Energie durch Stoffwanderung außerordentlich leicht an andere Orte geführt werden kann (auch an solche, die wie z. B. Wurzeln im Dunkeln leben und nicht selbst die Speicherung ausführen können), und daß sie auch zu Zeiten verwendet werden kann, in denen ein Energiegewinn unmöglich ist (z. B. nachts).
Auch durch intramolekulare Atmung wird Energie frei; doch genügt diese bei den meisten Organismen nicht zur Aufrechterhaltung des ganzen normalen Lebensbetriebes, bei vielen nur zu kümmerlicher Fristung des Lebens. Während manche Samen bei intramolekularer Atmung viele Stunden oder Tage am Leben bleiben und einzelne sogar die gleiche Kohlensäuremenge ausgeben wie bei Sauerstoffatmung — bei der Mehrzahl vermindert sich diese Menge rasch —, tritt bei anderen Pflanzen wahrscheinlich durch die als Gifte wirkenden reduzierten Stoffe bald der Tod ein, und die Leistung der intramolekularen Atmung ist hier in jeder Hinsicht ganz unbedeutend. Umgekehrt erlangt sie bei gewissen Organismen, von denen alsbald die Rede sein soll, ganz außerordentlich große Bedeutung.
B. Oxydation anorganischer Substanz[198].
Während die meisten Pflanzen in der geschilderten Weise organische Substanz, vor allem Kohlehydrate, veratmen, haben sich gewisse Bakterien ganz andere Energiequellen erschlossen. So oxydieren die im Boden weitverbreiteten Nitritbakterien Ammoniak zu salpetriger Säure, und die mit ihnen vergesellschafteten Nitratbakterien oxydieren die salpetrige Säure weiter zu Salpetersäure. Mit Hilfe der so gewonnenen freien Energie vermögen sie dann — wie S. 219 schon berichtet wurde — auch Kohlensäure zu assimilieren; die frei gemachte chemische Energie tritt an die Stelle der Sonnenenergie bei den typischen autotrophen Pflanzen. Ein Abbau organischer Substanz fehlt hier völlig; es wird also die Gesamtmenge assimilierter Nahrung dauernd festgehalten, so daß diese Organismen außerordentlich ökonomisch arbeiten. Da aber das ihnen zur Verfügung stehende Ammoniak nur in begrenzter Menge und nur von anderen Organismen geliefert wird, so können die Nitrobakterien keine so dominierende Stellung in der Natur einnehmen wie die grünen Pflanzen.
An die Nitrobakterien schließen sich die Schwefelbakterien an, die Schwefelwasserstoff zu Schwefelsäure oxydieren, wobei sie intermediär Schwefel bilden und als Reservestoff in ihrem Körper speichern. In ähnlicher Weise gewinnen andere Bakterien bei der Oxydation von Methan zu Kohlensäure und Wasser die nötige Betriebsenergie. Daß diese überall in erster Linie zur Synthese organischer Substanz aus CO2 dient, ist sehr wahrscheinlich.
Im Gegensatz zu diesen streng spezialisierten, autotrophen Bakterien ist die Verbrennung von Wasserstoff nicht die Eigenschaft ganz bestimmter „Wasserstoffbakterien“, sondern sie wird weit verbreitet von gewöhnlichen, typisch heterotrophen Bakterien ausgeübt, die daneben auch die Verbrennung organischer Substanz vollziehen. Offenbar ist es bei den sog. Eisenbakterien (z. B. Leptothrix ochracea) ähnlich, die vielleicht Eisen und Mangan nur dann wirklich nötig haben, wenn ihnen wenig geeignete organische Substanzen geboten werden.
C. Gärungen[199].
Mit der Entziehung des Sauerstoffes tritt intramolekulare Atmung ein; diese vermag zwar nicht bei höheren Pflanzen, wohl aber bei niederen die zur dauernden Erhaltung des Lebens nötige freie Energie zu liefern. Viele Bakterien, Pilze, auch gewisse Algen (Characeen) sind in auffallender Weise unabhängig vom Sauerstoff, sie nehmen mit geringen Spuren von ihm vorlieb, oder sie fliehen ihn überhaupt gänzlich und leben an sauerstoffreien Orten. Im Gegensatz zu dem verbreitetsten Typus von Organismen, die man aërobe oder Aërobionten nennt, heißen sie anaërobe oder Anaërobionten. Die beiden Extreme sind durch allerlei Abstufungen verbunden. Die echten Anaërobionten zersetzen organische Substanzen in sehr großen Mengen, und diese Zersetzung, die im Prinzip mit den Vorgängen bei der intramolekularen Atmung identisch ist, nennt man Gärung. Wie dort, so handelt es sich auch hier um Gewinnung gebundenen Sauerstoffs.
Das Prototyp der Gärung ist die alkoholische Gärung, die ganz besonders von Hefepilzen verursacht wird. Hier wird Zucker in Alkohol und Kohlensäure zerspalten, und dieser Vorgang hat bekanntlich eine große Bedeutung in der Technik (Bier-, Wein-, Branntweinbereitung). Der chemische Prozeß selbst ist der gleiche wie in der grünen Pflanze, die intramolekular atmet; im Gegensatz zu dieser aber vermag die Hefe in der Gärung einen vollen Ersatz für die Atmungstätigkeit zu finden. Sie ist aber nur so lange unabhängig vom Sauerstoff, als ihr ein geeignetes Gärmaterial (Zucker) zur Verfügung steht. Fehlt Zucker, so ist der Sauerstoff unentbehrlich, und es findet dann normale Atmung statt; ist Zucker und Sauerstoff gegeben, so tritt gleichzeitig Atmung und Gärung ein, es wird also ein Teil des Zuckers zu Kohlensäure und Alkohol, ein anderer zu Kohlensäure und Wasser verarbeitet. Es leuchtet ein, daß die Verarbeitung von Zucker zu Alkohol und Kohlensäure viel weniger Energie liefert als die vollständige Verbrennung zu Kohlensäure und Wasser. Deshalb versteht man es, daß die Hefe ungeheure Massen von Zucker verbraucht. Nur etwa 2% Zucker in der Nährlösung wird zum Aufbau von Körpersubstanz verbraucht (assimiliert), der Rest wird vergoren. Zur Ausführung einer so weitgehenden Spaltung des Zuckers besitzt die Hefe spezifische Enzyme, vor allem die Zymase.
Wenn bei der normalen Atmung die gesamte Verbrennungswärme der Glykose = 709 cal frei wird, so ist davon bei der Alkoholgärung die Verbrennungswärme von 2 Molekülen Alkohol 2 × 326 = 652 cal abzuziehen: somit werden nur 57 statt 709 cal frei.
Daß die chemische Tätigkeit der Hefe auf der Wirkung von Enzymen beruht[200], hat man schon lange vermutet. Erst E. BUCHNER aber gelang es, diese vom lebenden Plasma zu trennen. Da die „Zymase“ im Gegensatz zu anderen Enzymen nicht aus der Zelle herauszudiffundieren vermag, mußte sie nach Aufreißen der Zellen durch hohen Druck aus diesen herausgepreßt werden. Die Zymase ist übrigens kein einheitliches Enzym, sondern ein Gemisch vieler Enzyme, die zusammen schließlich zur Alkoholbildung führen.
Im einzelnen dürfte nach NEUBERG[201] dieser Prozeß etwa so verlaufen, daß zunächst das Zuckermolekül in 2 Moleküle Methylglyoxal übergeführt wird, die Brenztraubensäure liefern; diese wird durch CO2-Abspaltung in Acetaldehyd übergeführt. Acetaldehyd aber läßt sich als Zwischenprodukt der Gärung nachweisen und wird seinerseits auch direkt von der Hefe zu Alkohol reduziert.
Wenn auch die Hefe durch ihr Gärvermögen weitgehend unabhängig vom Sauerstoff ist, so kann man sie doch nicht zu den streng anaëroben Organismen rechnen, da sie in ihrem Wachstum durch freien Sauerstoff stark gefördert wird. Dementsprechend wird, da der chemische Umsatz von der Zahl der Hefezellen abhängt, mit der Zeit mehr Alkohol bei Sauerstoffzutritt als ohne solchen gebildet werden können. Andere Gärungsorganismen werden aber von freiem Sauerstoff direkt geschädigt und leben dementsprechend in der Natur nur an Orten, wo solcher fehlt. Zu diesen echten Anaërobionten gehören vor allem die Buttersäurebakterien, die Kohlehydrate aller Art, höhere Alkohole und Salze der Milchsäure in Wasserstoff und organische Säuren überführen, unter denen die Buttersäure nie fehlt. Sie spielen, da sie auch die sonst so schwer angreifbare Zellulose lösen, eine sehr große Rolle in der Natur: sie führen den von den Pflanzen in ihren Membranen festgelegten Kohlenstoff wieder in eine Form über, die eine weitere Verwendung durch andere Organismen gestattet, sie verhindern also ein Ausscheiden großer Mengen Kohlenstoffs aus dem Kreislauf der Stoffe (S. 240).
Auch bei der Buttersäuregärung soll das Kohlehydrat zunächst in Brenztraubensäure übergeführt werden, aus der dann durch eine Umlagerung Buttersäure neben freiem Wasserstoff auftritt. Indem für letzteren der freie Stickstoff als „Akzeptor“ fungiert, soll es zur Bildung von Ammoniak, also zur Stickstoffbindung kommen; vgl. 224[195].
Es können hier nicht alle Gärungen angeführt werden. Es sei nur noch die Milchsäuregärung genannt, die in der Milchwirtschaft (Sauermilch, Käsebereitung, Kumys, Kefir) und auch sonst in der Praxis (Säuerung von Gemüsen, z. B. Sauerkraut) eine große Rolle spielt. Auch sie geht anaërob vor sich, indem das Zuckermolekül entweder direkt in zwei Moleküle Milchsäure gespalten wird oder neben Milchsäure auch CO2 und H2 entstehen läßt.
War bisher vorwiegend von der Vergärung der Kohlehydrate die Rede, so muß jetzt noch hervorgehoben werden, daß alle, auch die komplizierteren organischen Verbindungen des Pflanzen- und Tierkörpers, vor allem also die Eiweißkörper, vergoren werden können. Die Eiweißvergärung pflegt man als Fäulnis zu bezeichnen, wenn sie ohne Sauerstoffzufuhr erfolgt, als Verwesung, wenn Oxydationen möglich sind. In der Natur treten zunächst gewöhnlich aërobe Bakterien bei der Eiweißvergärung auf, die den anaëroben den Weg bahnen; eine scharfe Grenze zwischen Verwesung und Fäulnis existiert also nicht. Unter allen Umständen wird das Eiweiß zunächst hydrolytisch gespalten. Es treten also die früher erwähnten Spaltungsprodukte auf, vor allem Aminosäuren. Diese werden weiter verändert, zumeist unter Abspaltung ihrer NH2-Gruppe und auch durch noch tiefergreifenden Abbau. Vielfach treten dann auch übelriechende Substanzen, wie Indol und Skatol, auf, die aber nicht bei jeder Eiweißgärung sich bilden müssen.
Es ist nicht möglich, eine scharfe Grenze zu ziehen zwischen den Dissimilationsvorgängen, die mit Eingreifen des Luftsauerstoffes und solchen, die ohne dieses sich vollziehen. Als Gärung müssen alle Dissimilationsprozesse, die von der typischen Atmung abweichen, bezeichnet werden. Demnach wäre auch die Entstehung von Äpfelsäure und Oxalsäure bei den Crassulaceen so gut wie die Entstehung von Oxalsäure bei Pilzen und Bakterien als Gärung zu bezeichnen. Und eine ganz typische Oxydationserscheinung, die Überführung des Alkohols in Essigsäure und Wasser, die durch die Essigbakterien bewirkt wird, muß ebenfalls als Gärung betrachtet werden.
Wenn allen diesen Vorgängen im Grunde ein Gewinn von Sauerstoff gemeinsam ist, bald von freiem, bald von gebundenem, so müssen schließlich auch solche Prozesse, bei denen anorganische Stoffe den Sauerstoff liefern, hier angeschlossen werden. So leben gewisse Bakterien anaërob, wenn ihnen Nitrate als Sauerstoffquelle dienen, wenn also diese Nitrate etwa bis zu freiem Stickstoff reduziert werden (Denitrifikation), oder wenn Sulfate etwa in Schwefelwasserstoff übergeführt werden (Sulfatreduktion). Es gibt sogar Bakterien (Micrococcus selenicus), die zwar nicht anaërob sind, aber doch den freien Sauerstoff nicht zu nützen vermögen, vielmehr nur aus leicht reduzierbaren Stoffen, wie Natriumselenit, Natriumthiosulfat, Indigkarmin oder Methylenblau Sauerstoff entnehmen können[202].
Kreislauf der Stoffe. Werden organische Substanzen, wie das in der Natur mit den Resten abgestorbener oder den Exkreten lebender Organismen stets geschieht, verschiedenartigen Mikroorganismen preisgegeben, so arbeiten sich diese wechselseitig in die Hand, und Stoffwechselprodukte der einen werden von anderen weiter zersetzt, bis nur anorganische Materie übrig ist, bis die organischen Verbindungen „mineralisiert“ sind. Als Endprodukte treten Kohlensäure, Wasser, Wasserstoff, Methan, Ammoniak, Stickstoff, Schwefelwasserstoff auf.
Alle diese Endprodukte der Gärung können wieder von anderen Organismen verwertet werden. Sehen wir von CO2 und H2O ganz ab, da diese zur Genüge besprochen sind, so wäre hervorzuheben, daß der Wasserstoff, das Methan, das Ammoniak und der Schwefelwasserstoff durch spezifische Bakterien oxydiert werden, daß der Stickstoff durch wieder andere Bakterien assimiliert wird. Durch dieses Zusammenarbeiten aller Organismen wird die einseitige Bildung und Anhäufung eines Stoffes verhindert; es entsteht ein fortwährender Kreislauf der Stoffe, durch den sich das Leben dauernd auf der Erde erhält. Existierte nur ein Typus von Organismen, so hätte dieser in kurzer Zeit durch seinen einseitigen Stoffwechsel sich jede Lebensmöglichkeit unterbunden.
D. Entwicklung von Wärme und Licht bei Atmung und Gärung.
Wärme[203]. Da die typische Atmung ein Oxydationsprozeß ist, so wird es begreiflich, daß eine Wärmeentwicklung mit ihr verbunden ist. Daß sich Pflanzen durch die Atmung aber meistens nicht fühlbar erwärmen, rührt daher, daß diese nicht ausgiebig genug ist, und daß die Transpiration der großen Flächen erhebliche Wärmeverluste herbeiführt, wodurch transpirierende Pflanzen meist sogar kühler als ihre Umgebung sind. — Auch bei einigen Gärungen werden nicht unbeträchtliche Wärmemengen frei, z. B. bei der Alkoholgärung. Bekannt ist ferner die Erhitzung, die in faulendem Mist eintritt und die in den „Mistbeeten“ der Gärtner ausgenutzt wird.
Werden Transpiration und Wärmestrahlung verhindert und werden zur Untersuchung lebhaft atmende Pflanzen ausgewählt, dann läßt sich in der Tat eine Erwärmung nachweisen; sehr deutlich z. B. mit angehäuften Keimpflanzen oder Blütenknospen. Eine starke Erwärmung ist an blühenden Kolben von Araceen beobachtet worden, die ihre Temperatur um 10–20° C durch intensive Atmung erhöhen. Ein Gramm der Kolbensubstanz liefert dabei in einer Stunde bis zu 30 Kubikzentimeter CO2, und in kurzer Zeit kann bei so intensiver Atmung die Hälfte der Trockensubstanz, der ganze Vorrat an Zucker und Stärke, veratmet werden. Auch in den großen Blüten der Victoria regia sind 15° C Temperaturerhöhung gemessen worden. Diese hohen Temperaturen in Blüten und Infloreszenzen locken Bestäubung vermittelnde Insekten an. — Besonders hohe Temperaturen erhält man, wenn Blüten, Blätter usw. in Dewargefäßen (z. B. Thermosflaschen) vor Wärmeverlusten bewahrt werden. Die Temperatur steigt dann unter Umständen auf 40–50° C und die Objekte sterben ab. Nach ihrem Tode erhöht sich dann die Temperatur durch die Tätigkeit von Mikroorganismen weiter.
Nach Verwundung wird die Atmung und auch die Erwärmung merklich gesteigert; das Gegenteil wird bei Hungerzuständen beobachtet.
Auch bei der Tabakfermentation findet eine beträchtliche Temperatursteigerung statt, und noch größer fällt diese aus, wenn feuchtes Heu oder feuchte Baumwolle in größeren Massen aufgetürmt sich selbst überlassen werden; es kommt dann durch die Entstehung leichtentzündlicher Gase schließlich zur Selbstentzündung. Am genauesten sind die Verhältnisse der Selbsterhitzung des Heus untersucht. Hier tritt zunächst durch die Atemtätigkeit des Bacillus coli ein Steigen der Temperatur bis auf 40° C ein; eine ganze Reihe von thermophilen Schimmelpilzen und Bakterien, deren Minimum etwa bei dieser Temperatur liegt, stellt sich dann ein; unter ihnen ist es namentlich der Bacillus calfactor, der die Temperatur bis zu 70° steigert. Schließlich gehen alle Organismen an der durch sie selbst produzierten Temperatur zugrunde; das Heu ist steril geworden.
Leuchten[204]. Unter denselben Bedingungen, die die Atmung unterhalten, bemerkt man bei einer beschränkten Zahl von Pflanzen ein Leuchten. Die bekanntesten leuchtenden Pflanzen sind gewisse Bakterien und das früher als „Rhizomorpha“ beschriebene Myzelium eines baumtötenden Hutpilzes, der Armillaria mellea. Auf toten Fischen und Fleisch treten oft Überzüge unschädlicher leuchtender Bakterien (Bacterium phosphoreum, Pseudomonas lucifera u. a.) auf. Das Leuchten zahlreicher Tiere scheint durchweg von Bakterien hervorgebracht zu werden, die in ganz bestimmten Organen dieser Tiere regelmäßig zur Entwicklung kommen.
Das Leuchten verschwindet in sauerstoffreier Umgebung, stellt sich aber bei Zutritt freien Sauerstoffs sofort wieder ein. Leuchtbakterien lassen sich deshalb als empfindliches Reagens zum Nachweis der Assimilation benutzen. Alle Umstände, die die Atmung fördern, verstärken das Leuchten und umgekehrt. Ein Nutzen der Lichtentwicklung für die Produzenten ist nicht bekannt.
Zweiter Abschnitt. Entwicklung[205].
Die Entwicklungsphysiologie soll hier in drei Abschnitten behandelt werden. Der erste bringt Vorbemerkungen, die rein deskriptiv manches näher ausführen, was schon im morphologischen Teil besprochen ist. Dann erst folgt die kausale Entwicklungsphysiologie, deren Ziel ist, die aufeinanderfolgenden Vorgänge der Entwicklung nach ihren Ursachen zu verstehen und willkürlich abzuändern. Die Ergebnisse sind freilich zur Zeit noch weit vom Ziel entfernt, wir haben noch viel mehr Probleme als Lösungen.
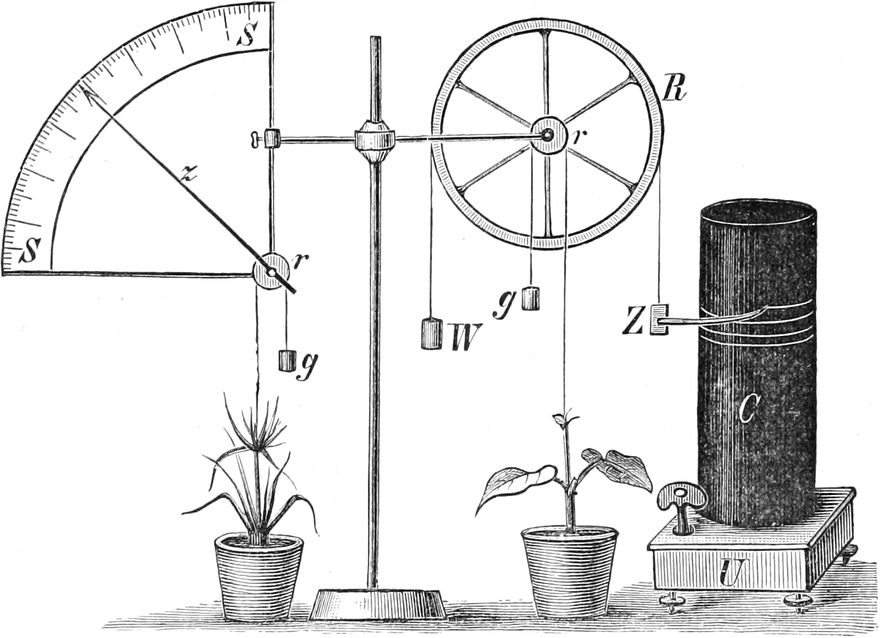
Fig. 254. Wachstumsmesser (Auxanometer). Links ein einfaches Hebelauxanometer (Zeiger am Bogen), rechts ein selbstregistrierendes Auxanometer. Nähere Erklärung im Text. Nach NOLL.
Es empfiehlt sich, diese Probleme in doppelter Weise zur Anschauung zu bringen: es sollen im 2. Abschnitt die Faktoren, die von Einfluß auf die Entwicklung sind, in den Vordergrund der Betrachtung gestellt werden, während umgekehrt im 3. Abschnitte gerade die Entwicklungsvorgänge das Einteilungsprinzip ergeben.
I. Vorbemerkungen.
Entwicklung, mit Gestaltsveränderung verbundenes Wachstum, ist eine der auffallendsten Lebenserscheinungen. Unter Wachstum versteht man nicht jede beliebige Volumvergrößerung. Wenn eine ausgetrocknete verschrumpfte Rübe im Wasser schwillt, so ist das kein Wachstum. Nur bleibende, nicht rückgängig zu machende Größenzunahme kann Wachstum genannt werden, mag dabei die Pflanze im ganzen Substanzgewinn oder -verlust erfahren. In der Regel ist freilich das Wachstum mit Substanzgewinn verbunden; die im Keller treibende Kartoffel aber erleidet durch Transpiration und durch Atmung Verluste, und doch wachsen ihre Triebe.
1. Wachstumsmessung.
Gesamtverlängerung. — Handelt es sich darum, die Zuwachsgröße einer Pflanze, d. h. die Gesamtverlängerung in der Zeiteinheit zu bestimmen, so kann man bei raschwüchsigen Organen, z. B. den Blütenschäften einer Agave, den Sprossen einer Bambusa, in bestimmten Zeitabschnitten (Tagen, Stunden) einen gewöhnlichen Maßstab anlegen und ablesen. — In der Regel aber ist es nötig, den Zuwachs der Pflanzen zum Zweck der Messung zu vergrößern. Das kann z. B. durch das Mikroskop geschehen, das den von der Pflanze durchschrittenen Raum beliebig zu vergrößern gestattet. Die bei gröberen Versuchsobjekten meist benutzte Methode der Vergrößerung ist aber die mittels Hebelübertragung. Die darauf beruhenden Apparate werden als Auxanometer bezeichnet.
Fig. 254 stellt links ein einfaches Auxanometer, den „Zeiger am Bogen“ vor, mit dem der Zuwachs eines Blütenschaftes beobachtet wird. Ein dicht unter der Gipfelknospe befestigter Faden läuft über die kleine Rolle r und wird durch das Gewicht g straff gehalten, ohne einen störenden Zug auf den Schaft auszuüben. z ist ein mit der Rolle r fest verbundener Zeiger, der etwa 20mal so lang ist als der Halbmesser der Rolle, den jeweiligen Zuwachs des Schaftes also zwanzigfach vergrößert an der Skala S angibt.
Um die zu bestimmten Zeiten hier notwendigen Ablesungen zu ersetzen, hat man selbstregistrierende Auxanometer verwandt, deren Konstruktion in Fig. 254 rechts in einfacher Ausführung dargestellt ist. Der große Hebelarm wird durch einen Radius der größeren Rolle R gebildet, der kleine durch einen Radius der kleinen Rolle r. Bei der durch den Sproßzuwachs erfolgenden Drehung der Rollen hebt sich ein mit dem Zeiger Z versehenes Metallstück, das durch das Gegengewicht W äquilibriert ist. Der horizontale spitze Zeiger berührt rechts eine durch das Uhrwerk U in gleichmäßige Drehung versetzte, mit einem berußten Papier überzogene Trommel C, auf der der Zeiger einen weißen Strich hinterläßt. Dreht sich die Trommel in je einer Stunde einmal, dann gibt der senkrechte Abstand zwischen den Zeigerspuren den jeweiligen stündlichen Zuwachs in bekannter Vergrößerung selbsttätig an.
Im allgemeinen ist die Zuwachsgröße der Pflanzen so gering, daß man bei kurzer Beobachtungszeit überhaupt kein Wachstum bemerkt. Nur gewisse Pilze und die Staubfäden mancher Gräser wachsen so rasch, daß man die Verlängerung mit bloßem Auge wahrnehmen kann. Der Fruchtkörper des Gasteromyceten Dictyophora verlängert sich nach A. MÖLLER um 5 mm, die Staubfäden von Triticum (Weizen) nach ASKENASY um 1,8 mm in der Minute; das Ende der letzteren rückt also etwa mit der gleichen Geschwindigkeit vor wie die Spitze des großen Zeigers einer Taschenuhr. Die nach diesen Staubfäden am schnellsten wachsenden Pflanzenteile, nämlich die Blattscheiden der Bananen, stehen mit 1,1 mm, die Bambusschößlinge mit 0,75 mm, kräftige Kürbissprosse mit 0,1 mm, die Hyphen von Botrytis mit 0,034 mm in der Minute schon erheblich dagegen zurück; die allermeisten Pflanzen erreichen aber auch unter günstigen Verhältnissen nur einen viel geringeren Zuwachs (0,005 mm und darunter in der Minute).
Niemals bleibt die Zuwachsgröße eines Organs dauernd gleich: auch bei konstanten äußeren Verhältnissen sieht man vielmehr die Zuwachse zunächst von sehr kleinen Werten bis zu einem Maximum ansteigen und dann wieder allmählich auf Null abklingen. Man nennt diese Erscheinung „die große Periode des Wachstums“. Ein Beispiel mag ihren Verlauf illustrieren:
Für das erste Stengelglied der Lupine wurden an aufeinanderfolgenden Tagen bei konstanter Temperatur im Dunkeln folgende Zuwachse (in Zehntelmillimeter) gefunden:
8, 9, 11, 12, 35, 43, 41, 50, 51, 52, 65, 54, 43, 37, 28, 18, 6, 2, 0.
Nicht immer freilich verläuft diese Periode so regelmäßig; vielfach treten durch „stoßweise Änderungen“ des Wachstums erhebliche Unregelmäßigkeiten in ihrem Verlauf ein.
Wachstumsverteilung. — In der Regel wächst ein Pflanzenteil nicht in seiner ganzen Ausdehnung, es gibt vielmehr an ihm ausgewachsene und wachsende Teile; und die wachsenden Abschnitte verlängern sich auch nicht etwa gleichmäßig, sondern sie bestehen aus verschieden rasch wachsenden Zonen, die allmählich ineinander übergehen. — Die Lage und die Länge der Wachstumszonen ist bei verschiedenen Organen nicht die gleiche. Die typische Wurzel hat eine einzige Wachstumszone, und diese liegt dicht hinter der Spitze und nimmt eine Länge von 5–10 mm ein; Luftwurzeln freilich haben eine Wachstumszone, die erheblich länger werden kann und im Extrem 1 m beträgt. Die Stengel verhalten sich ungleich. Solche, die keine scharf differenzierten Knoten besitzen, haben wie die Wurzeln bloß eine einzige Wachstumszone, aber die Länge der Wachstumszone ist immer beträchtlich, oft bis zu einem halben Meter. Wo aber typische Knoten ausgebildet sind, da haben wir so viele Wachstumszonen, als Internodien sich strecken, und diese sind entweder von weniger stark wachsenden Partien oder von ganz ausgewachsenen getrennt. Man spricht im letzteren Falle von interkalarem Wachstum; sehr schön ist dieses z. B, bei den Grashalmen ausgebildet, wo an der Basis jedes Internodiums eine Wachstumszone sich findet. Auch bei manchen Blättern, namentlich denen der Monokotylen, haben wir an der Basis eine interkalare Wachstumszone.
Die Verteilung des Wachstums wird dadurch festgestellt, daß man von Zeit zu Zeit die Entfernung gewisser natürlicher oder künstlich angebrachter Marken mißt.
So ist z. B. in Fig. 255 I eine Wurzelspitze dargestellt, die vom Vegetationspunkt aus (Punkt 0; darunter die Wurzelhaube) mit Tuschestrichen in Millimeterabstand versehen ist. 22 Stunden später sind diese Striche in der Weise auseinandergerückt, wie das Fig. 255 II zeigt. Das Wachstum ist also in der Wachstumszone ungleich; am oberen und unteren Ende verläuft es langsam und vermittelt so den Übergang zu der Partie, die das maximale Wachstum aufweist. Untersucht man den Zuwachs einer Querscheibe, z. B. des zwischen den Marken 0 und 1 gelegenen Millimeters, an aufeinanderfolgenden Tagen, so zeigt sich, daß sie erst langsam, dann schnell, dann wieder langsam wächst; mit anderen Worten: ein jeder Abschnitt der Wachstumszone zeigt die große Periode des Wachstums. Die verschiedenen von der Spitze aus abgetragenen Millimeter befinden sich in verschiedenen Stadien ihrer großen Periode; die 2 ersten sind im aufsteigenden Ast, 3 und 4 auf dem Gipfel, die übrigen im absteigenden Ast der Kurve. Entsprechendes gilt für andere Organe.
Zeitlich getrennte Wachstumsperioden treten z. B. an den Schäften von Taraxacum auf, die erste gelegentlich bei der Blütenentwicklung, die zweite bei der Fruchtbildung. Ähnlich verhalten sich andere Organe, deren Aufgabe zeitweise sich ändert (Blütenstiele bzw. Fruchtstiele von Linaria Cymbalaria, Arachis hypogaea, Tropaeolum).
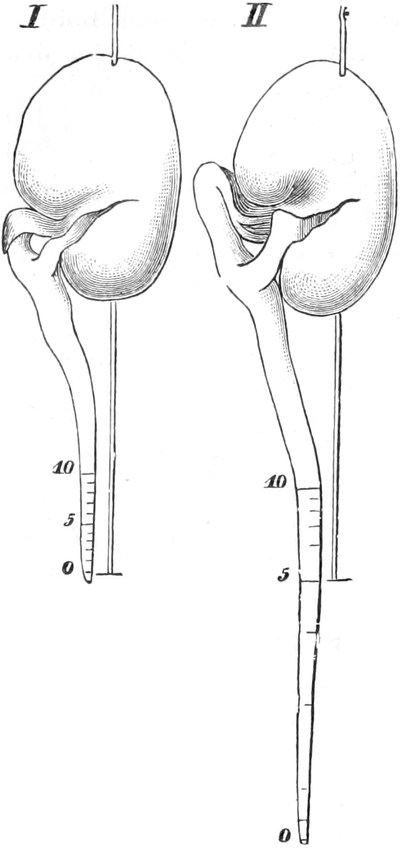
Fig. 255. Die Verteilung des Zuwachses an der Wurzelspitze einer Feldbohne (Vicia Faba). Bei I die Wurzelspitze durch Tuschemarken in 10 gleiche Querzonen von 1 mm geteilt. In II dieselbe Wurzel nach 22 Stunden. Die Tuschestriche sind durch ungleiches Wachstum der Zonen verschieden weit auseinandergerückt. Nach SACHS.
Wachstumsgeschwindigkeit. — Aus der Tatsache, daß in verschiedenen Organen ganz verschieden lange Zonen im Wachstum begriffen sind, kann man entnehmen, daß die Angaben über den Gesamtzuwachs eines solchen Organs, wie sie S. 243 gemacht wurden, keinen Schluß auf die eigentliche Wachstumsgeschwindigkeit, d. h. den Zuwachs der Längeneinheit in der Zeiteinheit zulassen. Bei den Sprossen von Bambusa z. B. ist die wachsende Zone viele Zentimeter, bei Botrytis nur 0,02 mm lang; wenn also Bambusa bei gleichen Außenverhältnissen etwa einen 20mal so großen Zuwachs in der Minute erfährt als Botrytis, so ist doch ihre Wachstumsgeschwindigkeit eine viel geringere. Zur Charakterisierung der Wachstumsgeschwindigkeit sind demnach Angaben der Verlängerung pro Minute in Prozenten der Wachstumszone nötig. Da ergibt sich dann eine Geschwindigkeit von 83% bei Botrytis, von nur 1,27% bei Bambusa; im Maximum hat man 220% bei gewissen Pollenschläuchen beobachtet, während manche noch immerhin ansehnlich wachsende Sprosse nur 0,5% ergeben.
Größe der Pflanze. Aus der Wachstumsgeschwindigkeit und der Größe der wachsenden Zone kann man die definitive Verlängerung eines Pflanzenteiles erst dann bestimmen, wenn man auch die Wachstumsdauer kennt. Durch die Variation dieser Faktoren ist die Größe der Pflanze wie auch ihrer Teile bestimmt, die, wie jedermann weiß, zwar in mannigfacher Weise von äußeren Faktoren abhängt, aber doch eine spezifisch verschiedene ist. Eine bestimmte Größe gehört so gut zu den spezifischen Eigenschaften eines Organismus wie seine Blattgestalt usw.; auch ist die ganze Organisation einer Pflanze derart, daß sie nur mit einer gewissen Größe verträglich ist.
2. Die Phasen des Wachstums.
Bei den einfachsten Pflanzen, niederen Algen, Pilzen, Bakterien, besteht die Entwicklung lediglich im Wachstum der Zelle mit darauffolgender Teilung. Diese Fälle sind in der Morphologie zur Genüge besprochen. Bei komplizierten Pflanzen findet sich zwar auch stets Zellenwachstum und häufig genug Zellteilung, aber beide Prozesse erscheinen unter das Gesamtwachstum untergeordnet, und dieses setzt sich vielfach aus drei verschiedenen, wenn auch zeitlich meist nicht scharf getrennten Phasen zusammen, der embryonalen Anlage der Organe, der Streckung und der inneren Ausgestaltung.
a) Embryonale Anlage. — Das embryonale Wachstum erfolgt normalerweise an Vegetationspunkten, und neue Vegetationspunkte entstehen im allgemeinen unmittelbar aus schon vorhandenen; nur bei den Wurzeln erfolgt die Ausbildung der Vegetationspunkte der Seitenglieder etwas verspätet aus Resten des Vegetationspunktes, die embryonalen Charakter beibehalten haben. Die charakteristischen Züge der Organbildung an Vegetationspunkten sind schon in der Morphologie behandelt. Dort wurde auch auf S. 64 und 65 die Symmetrie und die Polarität besprochen; auch diese werden häufig schon am Vegetationspunkt ausgebildet; ja die Polarität, der Gegensatz zwischen Basis und Spitze, wird bei den höheren Pflanzen schon in der Eizelle angelegt und bleibt, einmal entstanden, gewöhnlich dauernd erhalten. Hier aber muß noch betont werden, daß nicht alle Vegetationspunkte von ihresgleichen abstammen. Nicht nur durch die normale Organogenese, sondern auch durch Restitution kann die Entwicklung der Pflanze vonstatten gehen.
Unter Restitution[206] versteht man die Neubildung von Organen, die in der Regel nach Verstümmelung einer Pflanze auftritt und die an Orten erfolgen kann, wo an der unverletzten Pflanze keinerlei Wachstumstätigkeit eingetreten wäre. Man kann zwei Fälle von Restitution unterscheiden, je nachdem die Ersatzbildung aus der Wundfläche oder in einer gewissen Entfernung von ihr entsteht.
Die Wiederherstellung des verlorenen Organs von der Wundfläche aus findet sich bei niederen Pflanzen, z. B. bei Algen und Pilzen, nicht ganz selten, dagegen ist sie bei höheren Pflanzen von ganz beschränktem Vorkommen. Nur Gewebe, die noch embryonal sind, aber bei weitem nicht alle embryonalen Gewebe, sind dazu befähigt. Am häufigsten sind derartige Restitutionen am Vegetationspunkt der Wurzel beobachtet; hier wird nach Abtragung der Spitze durch einen Querschnitt diese wieder gebildet, wenn der Schnitt nicht weiter als etwa 0,5 mm von der Kuppe des Vegetationspunktes entfernt war. Längsgespaltene Wurzelvegetationspunkte pflegen sich derart zu ergänzen, daß eine solche Wurzel dann zwei Spitzen erhält. An Sproßvegetationspunkten kommt diese Art von Restitution nicht vor, an Blattanlagen ist sie sehr selten.
Dagegen ist die andere Art von Restitution ganz außerordentlich verbreitet im Pflanzenreich. Hier wird für das verlorene Organ dadurch Ersatz geschaffen, daß in der Nähe der Wunde ein neues gebildet wird oder ein in der Anlage schon vorhandenes auswächst. Auch für diese Art der Restitution liefern Algen und Pilze, vor allem aber die Laub- und Lebermoose, zahlreiche Beispiele, die hier nicht angeführt werden können. Wir beschränken uns auf die Betrachtung der Blütenpflanzen. Ganz besonders verbreitet ist bei diesen die Befähigung zur Wurzelbildung. Bei den Pelargonien, bei der Weide und bei vielen anderen Pflanzen hat man es durch Abtrennen der Sprosse in der Hand, an jeder beliebigen Stelle Wurzeln entstehen zu lassen; bei anderen Pflanzen sind es bevorzugte Orte, wie die älteren Knoten, an denen sie sich entwickeln. Nach der Wurzelbildung ergänzt sich aber der Stengel zu einer vollen Pflanze, wenn entweder vorhandene Blattachselknospen austreiben oder wenn neue Sproßvegetationspunkte auftreten. Auch abgeschnittene Blätter haben sehr oft die Fähigkeit, sich zu bewurzeln, doch ist mit dieser nur selten auch das Vermögen der Sproßbildung verbunden. Selbst aus abgeschnittenen Wurzeln können — wenn sie imstande sind, Knospen zu erzeugen — neue Pflanzen entstehen. Außer an Stengeln, Blättern, Wurzeln hat man auch schon an Ranken, Blüten und Früchten, vielfach unter Neubildung von Vegetationspunkten, Knospen, auftreten sehen. Wird der Vegetationspunkt einer Blütenpflanze zerstört, so kann aus dem Meristem oberhalb der jüngsten Blattanlagen ein Ersatzvegetationspunkt geschaffen werden. Ist hier die Restitution auf ganz embryonale Zellen beschränkt, so sehen wir in anderen Fällen ältere, zum Teil schon ausgewachsene Zellen wieder anfangen zu wachsen und sich zu teilen, also wieder embryonal werden. Vielfach bildet sich so zunächst ein besonderes Gewebe an der Wunde: der Kallus; im Innern dieser Zellwucherung treten dann Sproßanlagen auf. In wieder anderen Fällen sehen wir ausgewachsene Zellen, mögen das nun Parenchymzellen oder Epidermiszellen sein, direkt, d. h. ohne Kallusbildung, zu Vegetationspunkten werden. So stellt z. B. die Fig. 256 die Entstehung eines Begoniensprosses aus einer Epidermiszelle des Blattes dar.
Fig. 256. Querschnitt durch das Blatt von Begonia. Vergr. 200. Bildung eines Adventivsprosses aus einer Epidermiszelle nach HANSEN. a Die Epidermiszelle hat sich einmal durchgeteilt. b Aus der Epidermiszelle ist ein vielzelliges Meristem geworden.
Nicht nur äußerlich sichtbare Organe, sondern auch Gewebe können sich aus ausgewachsenen Parenchymzellen bilden. So werden z. B., wenn die Leitbahnen unterbrochen worden sind, aus dem Parenchym neue Gefäße gebildet, die wieder eine Verbindung herstellen. Nicht immer freilich wird das entfernte oder unterbrochene Gewebe wieder gebildet; häufig kommt es zu Ersatzbildungen. So wird in der Regel die Epidermis durch Kork ersetzt, und nur ausnahmsweise kommt es zu ihrer echten, mit der Bildung von Spaltöffnungen verbundenen Wiederbildung.
Hier anzuschließen wäre auch die Neubildung der Epidermis, wie sie im normalen Verlauf der Entwicklung bei bestimmten Araceen sich einstellt, die Löcher in ihren Blattspreiten entstehen lassen. Bei Monstera deliciosa sterben einzelne Stellen der Spreite ganz junger Blätter ab. Um diese Stellen tritt das Mesophyll in Teilung ein und bildet aus der äußersten Zellschicht eine sekundäre Epidermis, die nunmehr die Löcher auskleidet und an die primäre Epidermis der beiden Blattflächen anschließt. — Auch sonst finden sich in der normalen Entwicklung vielfach Vorgänge, die man als Restitutionen betrachten kann; z. B. die wiederholte Korkbildung (S. 139).
Neben der Tatsache, daß Restitution eintritt, interessiert auch die Frage, wo sie sich einstellt. Und da zeigt sich dann vielfach, daß die Polarität, die an der intakten Pflanze auffällt, sich auch an der restituierenden geltend macht. So pflegen an Stengeln die Sprosse am Apikalende, die Wurzeln am Basalende aufzutreten, während an der Wurzel genau die entgegengesetzte Verteilung besteht. Auch bei niedrig organisierten Pflanzen zeigt sich oft eine Polarität in den Restitutionsprozessen. Wird z. B. ein Zellfaden einer Cladophora in Einzelzellen zerlegt, so bildet jede an der Basis ein farbloses Rhizoid, an der Spitze einen grünen Faden.
Fig. 257. Blatt von Begonia als Steckling behandelt. Mit den Restitutionssprossen. Nach STOPPEL.
An Laubblättern tritt bei Restitutionen dieser Gegensatz von Basis und Spitze nicht zutage. Das mag damit zusammenhängen, daß das restituierende Blatt nicht in die Neubildung eingeschaltet wird; es entsteht vielmehr an der Blattbasis eine völlig neue Pflanze, worauf das Blatt selbst abstirbt. In einzelnen Fällen treten auch die Neubildungen auf der ganzen Blattfläche ein (Torenia); manchmal läßt sich aber der Ort ihrer Entstehung durch Einschnitte in die Lamina beeinflussen: bei Begonia z. B. (Fig. 257) bilden sich die jungen Pflänzchen oberhalb der Schnitte.
Die besprochenen Erscheinungen der Restitution haben eine große Bedeutung für die Gärtnerei, da sie gestatten, Pflanzen ohne Zuhilfenahme von Samen rasch zu vermehren. Bei dieser künstlichen Vermehrung werden abgetrennte Teile von Pflanzen benutzt, um aus ihnen wieder vollständige Pflanzen zu erzielen. Das gelingt bei manchen Pflanzen leicht, bei anderen ist es schwieriger, bei wieder anderen ist es überhaupt nicht möglich. Das einfachste Verfahren ist die Fortpflanzung durch Stecklinge, d. h. das Einsetzen abgeschnittener Zweige in Wasser, Sand oder Erde, wo sie sich bewurzeln (Oleander, Pelargonien, Tradescantien, Fuchsien, Weiden usw.). Durch abgetrennte Blätter werden hauptsächlich die Schiefblätter (Begonien) vermehrt. Selbst im Zusammenhang mit ihrer Mutterpflanze erzeugen die Blätter mancher Gewächse jungen Nachwuchs (Bryophyllum). Auch aus Wurzeln und Wurzelstücken können einzelne Pflanzen vermehrt werden, wie z. B. der Löwenzahn (Taraxacum).
b) Streckung. Um in Funktion treten zu können, müssen sich die embryonalen Anlagen vergrößern und entfalten; das geschieht durch den Prozeß der Streckung in höchst eigenartiger, haushälterischer Weise. Die Vergrößerung erfolgt nämlich vor allem durch Einlagerung von Wasser („Schwellwasser“), das von außen aufgenommen werden kann. Organische Substanz muß nur zum Flächenwachstum der Zellhaut aufgewandt werden. Dagegen bedarf es keiner Vermehrung des Protoplasmas bei der Streckung; es wird also gerade die besonders kostbare N-haltige Substanz gespart. In dieser Hinsicht besteht ein großer Unterschied im Wachstum der Pflanzen gegenüber dem typischen Tier, dem eine der „Streckung“ entsprechende Größenzunahme abgeht.
Schon die embryonale Zelle des Vegetationspunktes enthält in der Zellhaut und dem Protoplasma reichliche Wassermengen; die gesamte organische Substanz ist ja mit Wasser imbibiert. Bei fortgesetzter Wasseraufnahme von außen tritt aber eine Sonderung zwischen dem wasserdurchtränkten Protoplasma und den mit wäßriger Lösung gefüllten Vakuolen auf, und schließlich kommt es durch Verschmelzen der Vakuolen zur Ausbildung des einzigen zentralen „Saftraumes“ und des peripheren Plasmaschlauches (vgl. S. 9, Fig. 3). Daß der Saftraum der Sitz osmotischer Kräfte ist, wurde schon früher (S. 191) ausgeführt; der Turgordruck aber ist eine unentbehrliche Bedingung für das Flächenwachstum der Zellhaut.
Zellen, deren Turgeszenz (S. 191) durch Wasserentzug aufgehoben ist, zeigen kein Wachstum mehr. Man nimmt deshalb an, daß die mechanische Dehnung der Zellhaut ihr Wachstum erleichtert oder erst ermöglicht. Man darf aber nicht glauben, daß irgendeine Proportionalität zwischen Wachstum und Dehnung existiere. Auch läßt sich die Dehnung durch den Turgordruck keineswegs durch eine beliebige mechanische Dehnung ersetzen. Das Protoplasma spielt eben beim Flächenwachstum der Zellhaut stets die Hauptrolle, und mit seiner Betätigung muß es wohl zusammenhängen, daß manchmal Zellhäute bei sehr schwacher Spannung ausgiebig wachsen.
Über die Vorgänge beim Zellhautwachstum, die man als Apposition und Intussuszeption bezeichnet, ist S. 29 das Nötige gesagt worden. Bei Flächenwachstum ohne Substanzaufnahme („plastische Dehnung“), dem dann gewöhnlich Lamellenanlagerung folgt, ist die Turgordehnung eine leichtverständliche Voraussetzung des Wachstums; bei Intussuszeptionswachstum erscheint uns der Turgordruck weniger notwendig.
Wenn durch Wachstum der Zellhaut erneute Wasseraufnahme ermöglicht wird, muß der Zellsaft zunächst verdünnt werden. Tatsächlich tritt eine solche Verdünnung nicht ein, weil das Protoplasma der wachsenden Zelle fortwährend die Konzentration des Zellsaftes zu regulieren vermag. Durch Überführung von Zucker in organische Säuren kann der osmotische Wert erheblich vergrößert werden; würde z. B. Oxalsäure aus Glykose gebildet, so könnte er auf das Dreifache seines früheren Wertes steigen. Umgekehrt kann er z. B. durch völlige Verbrennung von Zucker bei der Atmung ganz erheblich verringert werden.
Neben der Streckung in der Längsrichtung existiert auch eine Streckung in der Querrichtung (Dickenwachstum). Der Durchmesser der fertigen Wurzel, des fertigen Stengels z. B. ist größer, oft beträchtlich größer als unmittelbar am Vegetationspunkt. Man unterscheidet, wie S. 121 auseinandergesetzt ist, ein primäres vom sekundären Dickenwachstum. Nur das primäre Dickenwachstum ist ein reines Streckungswachstum; beim sekundären werden durch ein interkalares Meristem, das Kambium, zunächst neue embryonale Zellen geschaffen, die erst allmählich in Streckung übergehen.
Gewebespannung. Die Streckung der Zellen in die Länge und Weite erfolgt in einem Querschnitt eines Organs nicht immer gleichmäßig und gleichzeitig. Sehr verbreitet findet sich z. B. bei wachsenden Stengeln die Erscheinung, daß das Mark ein stärkeres Streckungsbestreben hat als die peripherischen Gewebe. Da eine Kontinuitätstrennung zwischen beiden nicht eintreten kann, kommt es zu Spannungen („Gewebespannung“); das Mark dehnt die Rindengewebe, diese komprimieren das Mark: die tatsächliche Länge des Organs ist eine aus antagonistischen Bestrebungen resultierende. Trennt man die Gewebe künstlich, so nimmt jedes seine spezifische Länge an, das Mark verlängert sich, die Rinde kontrahiert sich: die Spannung hört auf.
Diese in wachsenden Organen weit verbreitete Gewebespannung kann man in folgender Weise demonstrieren. Löst man in einem Sonnenblumensproß mit Hilfe des Korkbohrers das Mark eine Strecke weit aus seinem Zusammenhang mit den Nachbargeweben, so tritt es nach Entfernung des Bohrers an der Schnittfläche weit hervor (Fig. 258, 1). Wird ein Sproß der Länge nach gespalten, so krümmen sich die beiden Hälften nach außen, da das Mark sich verlängert, die Epidermis sich verkürzt. Selbst an hohlen Sprossen, z. B. den Blütenschäften des Löwenzahns (Taraxacum), besteht eine Spannung zwischen inneren und äußeren Gewebeschichten. Wird ein Taraxacum-Stengel der Länge nach gespalten, so krümmen sich seine Teile nach außen (Fig. 258, 2a), und diese Krümmungen nehmen noch erheblich zu (Fig. 258, 2b) wenn das Objekt in Wasser gelegt wird.
Auch in Blättern und Wurzeln finden sich Gewebespannungen. Die Spannungen müssen nicht ausschließlich in der Längsrichtung eintreten; es gibt auch Querspannungen. So wird z. B. die Rinde von Bäumen, die sekundär in die Dicke wachsen, in tangentialer Richtung ganz beträchtlich gedehnt; sie kontrahiert sich also nach Loslösung vom Holzkörper.
Die Gewebespannungen bilden sich in geringer Entfernung vom Vegetationspunkt mit dem Beginne der Streckung allmählich aus, und sie verschwinden im allgemeinen wieder in der ausgewachsenen Zone. In einigen Fällen bleiben sie aber dauernd erhalten (S. 297). Sie sind von großer Bedeutung für die wachsenden Gewebe; sie vermehren die schon durch die Turgeszenz der Einzelzellen bedingte Festigkeit. Die Gewebespannung hat auch eine gewisse Ähnlichkeit mit der Turgeszenz der Einzelzelle; das zeigt sich am deutlichsten beim typischen Stengel: wie der Zellsaft durch den osmotischen Druck die Zellhaut dehnt, so expandiert das schwellende Mark die Rindenpartien. Wie aus der Dehnung der Zellhaut, so resultiert auch aus der der Rinde ein vermehrter Widerstand gegen Deformationen, also eine vergrößerte Festigkeit.
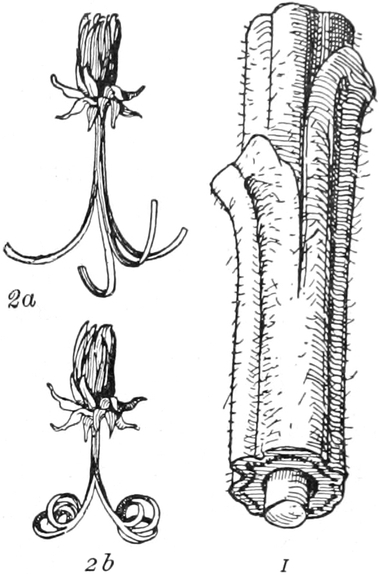
Fig. 258. 1 Sproß von Helianthus annuus nach Entfernung der Blätter; Mark mit dem Korkbohrer von der Peripherie getrennt. 2 Blütenstand von Taraxacum. Stiel der Länge nach übers Kreuz gespalten. a Sofort nach dem Spalten, b nach Einlegen in Wasser.
Die Gewebespannung wird dadurch aufgehoben, daß sämtliche Zellen schließlich die mittlere Länge dauernd annehmen, die ihnen durch die antagonistischen Bestrebungen diktiert wird. Manchmal aber zeigen gewisse Zellen, nachdem sie ihre größte Länge erreicht haben, ein ganz beträchtliches, mit Änderung ihrer Form verbundenes Kontraktionsbestreben. Sehr verbreitet kommt das z. B. bei Wurzeln vor, wo die Zellen der Rinde und die zentralen Partien durch zwischenliegende Gewebe, die sich kontrahieren, in Falten gelegt werden. Die Bedeutung dieser Wurzelkontraktion (S. 154), die eine Verkürzung der ausgewachsenen Teile um 10–70% herbeiführen kann, ist sehr groß. Sie bewirkt es z. B., daß die Blätter vieler „Rosettenpflanzen“ trotz des andauernden Längenwachstums des Stammes doch immer dem Boden angedrückt bleiben; sie bedingt und reguliert das Eindringen vieler Knollen und Zwiebeln in eine bestimmte Tiefe der Erde; sie erhöht schließlich auch die Befestigung der Pflanze im Boden, da durch straffe Wurzeln eine größere Stabilität erzielt wird als durch schlaffe.
c) Innere Ausbildung. Die Zellen des typischen Vegetationspunktes des Sprosses und der Wurzel behalten andauernd ihre Wachstums- und Teilungsfähigkeit. Man nennt sie embryonale Zellen. Alle Organe, die mit solchen Zellen versehen sind, haben im Prinzip die Befähigung zu unbegrenztem Wachstum. Embryonale Gewebe finden sich nicht nur am Vegetationspunkt, sondern auch in den sekundären Meristemen (S. 40).
Ein Teil der embryonalen Zellen, in Organen mit begrenztem Wachstum sogar alle, verwandelt sich in somatische Zellen, Dauergewebe, die bald mit Wachstum und Teilung aufhören und früher oder später dem Tode verfallen (S. 272).
Die innere Ausbildung der Organe beginnt direkt hinter dem Vegetationspunkt und dauert sehr verschieden lang. Während Haare vielfach außerordentlich rasch fertiggestellt werden, wird die definitive Ausgestaltung von inneren Geweben oft erst nach Abschluß der Streckung vollendet; falls sekundäres Dickenwachstum eintritt, ist sie überhaupt nie abgeschlossen. Die Ausbildung von „Dauergeweben“ aus den Ur- und Folgemeristemen ist im morphologischen Teil schon geschildert.
II. Die Faktoren der Entwicklung.
Wenn wir den Versuch machen, die Faktoren zu besprechen, die von Einfluß auf die Entwicklung sind, so kann es sich da immer nur um Beispiele handeln, die uns in möglichst charakteristischer Weise den Einfluß eines einzelnen solchen Faktors vor Augen führen sollen. An Vollständigkeit ist weder in der Aufzählung der Faktoren noch ihrer Wirkung gedacht. Wie in anderen Fällen, so können wir auch hier die Faktoren in zwei Gruppen bringen: äußere und innere.
A. Äußere Faktoren.
Als äußere Faktoren treten uns alle die Kräfte und Stoffe entgegen, die wir schon beim Stoffwechsel als physiologisch wirksam kennen gelernt haben, oder die bei den Bewegungen eine Rolle spielen.
Gewisse äußere Faktoren sind schon S. 185 genannt und als allgemeine Lebensbedingungen bezeichnet worden; ohne diese gibt es überhaupt keine Entwicklung. Neben der allgemeinen (formalen) Bedeutung können aber dieselben Faktoren auch noch eine andere Bedeutung für das Wachstum haben. Durch Wechsel in ihrer Intensität, Qualität, eventuell auch Richtung, können quantitative, ja sogar auch qualitative Änderungen in den Organen der Pflanzen hervorgerufen werden. Wir nennen diese Wirkungen „formativ“ und stellen leicht fest, daß überall der Zusammenhang zwischen Ursache und Wirkung ein sehr komplizierter ist.
1. Temperatur[207]. Wie beim Stoffwechsel, so konstatieren wir auch jetzt, daß eine gewisse Temperatur unerläßliche formale Bedingung für das Wachstum ist.
Eine zu niedere Temperatur (etwa 0° oder weniger) und ebenso eine zu hohe (40–50° oder mehr) heben das Wachstum völlig auf. Zwischen dem Minimum und dem Maximum liegt dann, meist nicht in der Mitte, sondern dem Maximum genähert bei etwa 22–37° das Optimum (Fig. 259). Im einzelnen zeigen aber die Pflanzen, die verschiedene Klimate bewohnen, recht große Differenzen in der Lage der Kardinalpunkte (vgl. S. 185) der Temperatur. Daß auch die verschiedenen Individuen der gleichen Art große Unterschiede in der Abhängigkeit ihres Streckungswachstums von der Temperatur aufweisen, erkennt man z. B. an der ungleichen Entwicklung der Knospen der Roßkastanien im Frühjahr. Aber auch am einzelnen Individuum unterliegen die Wachstumsprozesse der verschiedenen Organe einer ganz differenten Beeinflussung durch die Temperatur.
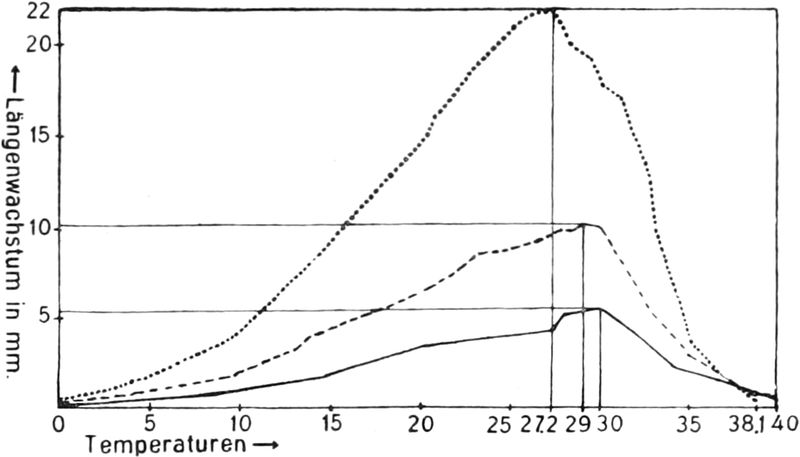
Fig. 259. Abhängigkeit des Wachstums von der Temperatur nach TALMA. Die Abszisse gibt die Temperatur. Die Kurven geben den Zuwachs der Wurzeln von Lepidium sativum an, und zwar die ausgezogene Linie in 31⁄2 Stunden, die gestrichelte in 7 Stunden und die punktierte in 14 Stunden. Man sieht, daß das Optimum mit der Dauer des Versuchs auf niedrigere Temperaturen rückt.
Bei Pflanzen tropischer Klimate kann beispielsweise das Minimum bei +10° C liegen, während unsere, oft die Schneedecke durchbrechenden, ersten Frühjahrspflanzen ebenso wie die Bewohner der Hochalpen und der polaren Regionen bei Temperaturen wenig über 0° noch kräftig wachsen. — Zahlreiche unserer Frühlingspflanzen zeigen, daß die Blütenentfaltung durch niedrigere Temperaturen gefördert werden kann als die Laubblattentfaltung.
2. Licht[208]. Das Licht ist wenigstens nicht allgemein eine so unentbehrliche Wachstumsbedingung wie die Temperatur. Es gibt Pflanzen (Bakterien und Pilze), die ihre ganze Entwicklung normal auch im Dunkeln vollziehen können. Wenn das bei der grünen Pflanze nicht der Fall ist, so liegt das zum Teil schon daran, daß hier das Licht ja zur Herstellung wichtiger Baustoffe unentbehrlich ist. Sind aber solche Pflanzen reichlich mit Reservestoffen versehen (Samen, Rhizome), so können sie meistens ohne Licht lange Zeit wachsen. Dabei nehmen sie freilich abnorme Gestalten an, von denen S. 252 noch die Rede sein soll. Es fehlt aber nicht an Organen, denen wenigstens vorübergehend eine gewisse Lichtmenge geboten werden muß, damit sie überhaupt ihre Entwicklung beginnen können (Samen und Sporen, S. 267). Andererseits gibt es für jedes Organ eine gewisse Lichtstärke, die das Wachstum sistiert. Diese ist bei Schattenpflanzen geringer als bei Lichtpflanzen.
Der Einfluß verschiedener Beleuchtungsstärke auf die Wachstumsgeschwindigkeit wurde früher dahin gedeutet, daß „Licht das Wachstum hemmt, Dunkelheit es fördert“. Es gibt aber nur wenige einwandfreie Versuche, die über den Erfolg einer bestimmten konstanten Beleuchtungsstärke bei konstanter Temperatur berichten. In vielen Fällen muß jedoch diese alte Darstellung auch heute noch als wahrscheinlich gelten, wenn auch in dem eingehend studierten Fall von Avenakeimsprossen sich ergeben hat, daß das Licht am 1. Tag eine fördernde, erst späterhin eine hemmende Wirkung ausübt. Wird ein Avenakeimling eine Zeitlang bei konstanter Beleuchtung kultiviert und dann in eine höhere, aber ebenfalls konstante Beleuchtung gebracht, so zeigt sich auch hier die gleiche doppelte Wirkung des Lichtes, zuerst Förderung und dann Hemmung des Wachstums. Umgekehrt wirkt eine Abnahme der Beleuchtungsstärke: nach anfänglicher Abnahme folgt eine Zunahme des Wachstums.
Viel öfter ist in den letzten Jahren der Einfluß eines Lichtwechsels auf das Längenwachstum studiert worden. Es hat sich gezeigt, daß ebenso eine Zunahme wie eine Abnahme der Beleuchtung das bisher gleichförmige Wachstum ungleichförmig macht. In manchen Fällen tritt bei Beleuchtungszunahme zuerst Wachstumsbeschleunigung, dann Hemmung ein, manchmal aber wird auch der umgekehrte Erfolg beobachtet. Meist tritt bei dieser „Lichtwachstumsreaktion“ (BLAAUW) nicht nur ein Wellenberg und ein Wellental auf, sondern es folgen einander mehrere Wellen von abnehmender Amplitude, bis dann der stationäre Zustand erreicht wird, der noch genauer zu erforschen ist.
Sehr groß sind die formativen Erfolge[209] des Lichtes, doch verhalten sich die einzelnen Organe dabei sehr verschieden. Das tritt nirgends deutlicher in Erscheinung als bei dauernder Verdunkelung. Wie eingangs bemerkt, kann eine solche bei Autotrophen nur bei genügender Versorgung mit Reservestoffen längere Zeit durchgeführt werden und bedingt dann ein völlig verändertes Wachstum und deshalb ein ganz fremdartiges Aussehen der Pflanzen. Diese als Etiolement oder Vergeilung bezeichnete Erscheinung kommt dadurch zustande, daß einzelne Organe im Wachstum gefördert, andere gehemmt werden. Bei Dikotylen findet man z. B. die Stengel stark überverlängert und schlaff. Überverlängert sind auch die Blattstiele, während die Blattspreiten klein bleiben und lange in der Knospenlage verharren (Fig. 260). Da im Dunkeln zwar die gelben Chloroplastenfarbstoffe, nicht aber der Chlorophyllfarbstoff gebildet werden kann, so erscheinen die Blätter etiolierter Pflanzen gelb, während die chloroplastenarmen Stengel weiß aussehen. Etiolement kommt aber auch bei nichtgrünen Pflanzen vor: gewisse Hutpilze z. B. verlängern bei Verdunkelung ihren Stiel ganz beträchtlich unter gleichzeitiger Verkleinerung der Hüte.
Auch im inneren Bau bestehen beträchtliche Differenzen zwischen der etiolierten und normalen Pflanze. In etiolierten Pflanzen sind die Gewebe wenig differenziert, es fehlen die verdickten Zellen.
Die Überverlängerung gewisser Organe bei gleichzeitiger Reduktion anderer hat in der Natur bei allen im Dunkeln austreibenden Samen und Rhizomen eine große ökologische Bedeutung. Die nur am Licht funktionierenden Teile werden zunächst noch nicht ausgebildet, die Baustoffe für sie, insbesondere auch für das Chlorophyll gespart; die starke Streckung der anderen Organe, die vorzugsweise auf Wassereinlagerung beruht, hat den Effekt, daß die lichtbedürftigen Teile möglichst bald aus der Dunkelheit herausbefördert werden.
Fig. 260. Zwei gleichalte Keimpflänzchen des weißen Senfs (Sinapis alba). E Im Dunkeln erwachsen, etioliert. N Bei gewöhnlicher Tagesbeleuchtung gewachsen, normal. Nach NOLL.
Auch ohne zu dem Extrem völliger Verdunkelung zu greifen, kann man weitgehende formative Erfolge durch verschiedene Beleuchtungsstärke erzielen. Am genauesten sind solche bei den Farnprothallien durch die Studien von KLEBS bekannt geworden. Er fand:
1. Bei schwachem Licht (Osramlampe von 27 MK) bilden die Prothallien oft mehr als 2 mm lange, unverzweigte Fäden ohne jede Zellteilung.
2. Bei etwas stärkerem Licht bleibt die Gestalt des Prothalliums die gleiche, aber es treten Querwände auf.
3. Bei etwa 250 MK hört der Zellfaden auf und wird durch die Zellfläche ersetzt. Bei passender Beleuchtungsstärke kann schon die zweite Zelle des Prothalliums zur Flächenbildung übergehen; die Fadenbildung wird also völlig unterdrückt.
4. Bei 500–1000 MK endlich treten Zellkörper auf.
Weitere formative Erfolge der Beleuchtungsstärke treten uns in der Gestalt und im Bau der Laubblätter entgegen. Schattenblätter weisen einen ganz anderen Bau auf als die in voller Sonne erwachsenen Blätter der gleichen Spezies. Sie sind dünner, ihre „Palisadenzellen“ verjüngen sich nach unten trichterförmig, lassen weite Interzellularen zwischen sich und treten auch nur in einer Reihe auf, während am Licht die Palisaden höher werden und auch in mehreren Schichten sich ausbilden können.
Fig. 261. Taraxacum officinale. 1 in der Ebene, 2 im Hochgebirge kultiviert. Beide gleichmäßig verkleinert. Nach BONNIER.
Die Pflanzen der Alpen, die das Sonnenlicht länger, intensiver und in anderer Zusammensetzung erhalten als die der Ebene, weichen auch in ihrem ganzen Habitus (Fig. 261) weit von diesen ab. Ihre Vegetationsorgane sind gedrungen, ihre Blüten groß und intensiv gefärbt. Indes sind neben dem Licht auch andere Faktoren bei dieser Abänderung beteiligt.
Wo im Laufe der Entwicklung zweierlei Blätter produziert werden, wie z. B. bei Campanula rotundifolia, manchen Wasserpflanzen usw., da zeigen sich die Jugendblätter an die schwache, die Folgeblätter an eine hohe Beleuchtungsstärke gebunden (S. 270). Auch die definitive Größe einer Pflanze kann von der Beleuchtung abhängen. Die Fig. 262 zeigt die große Periode von Avena bei verschiedenen Beleuchtungen. Sie läßt ohne weiteres erkennen, daß in starkem Licht die Pflanzen viel kleiner bleiben als in schwachem Licht.
Die Wirkung der verschiedenen Strahlenarten[210], aus denen das weiße Tageslicht besteht, ist nicht die gleiche. Wenn Licht die Streckung des Stengels hemmt, so sind dabei die kurzwelligen blauen und violetten Strahlen wirksam, während sich rote Strahlen wie Dunkelheit verhalten.
Bei den Farnprothallien wird durch rotes Licht das Wachstum wie durch Dunkelheit gefördert, aber die Zellteilung gehemmt, während umgekehrt die blauen und violetten Strahlen das Wachstum hemmen, aber die Teilung fördern. Da das Licht nicht nur als Wachstumsreiz, sondern auch als Energiequelle tätig ist, so ist die Komplikation der Erscheinungen einigermaßen verständlich. — Ultraviolettes Licht schädigt die Pflanze, Radium- und Röntgenstrahlen wirken hemmend auf Wachstumsvorgänge ein, können aber wie Gifte (S. 257) in kleinen Mengen das Wachstum fördern[211].
Neben der Intensität und der Qualität des Lichtes hat auch seine Richtung eine große Bedeutung für die Ausgestaltung des Pflanzenkörpers. Einseitig einfallendes Licht führt zu Krümmungen (Phototropismus, vgl. S. 307). Aber auch auf Polarität und Symmetrie hat das Licht Einfluß. So kann z. B. bei niedrig organisierten Pflanzen an der Zelle, von der die Entwicklung ausgeht, die stärker beleuchtete Seite zur Spitze, die andere zur Basis werden. Oder es kann ein ursprünglich radiärer Vegetationspunkt durch einseitige Beleuchtung zu einem bilateralen oder dorsiventralen werden. Endlich kann auch ein Organ, nachdem es längst aus dem embryonalen Stadium herausgetreten ist, noch durch einseitige Lichtwirkung dorsiventral werden, z. B. indem es bloß auf der Schattenseite Wurzeln bildet. — Und wenn es gelingt, experimentell die äußere Symmetrie umzugestalten, so ist damit in der Regel auch der innere Bau verändert.
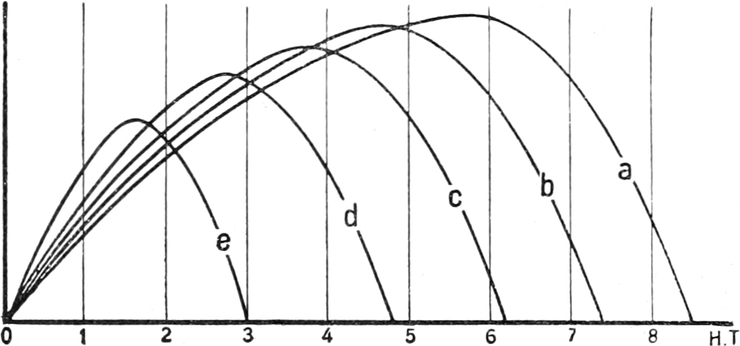
Fig. 262. Große Periode des Wachstums der Avenakoleoptile nach SIERP. Die Abszisse gibt die Zeit in halben Tagen an, die Ordinaten den Zuwachs. Kurve a bei Dunkelheit, b, c .. bei zunehmender Beleuchtungsstärke.
Bei der Keimung der Sporen von Equisetum wird die Richtung der ersten Scheidewand und damit die Lage von Basis und Spitze durch die Lichtrichtung bestimmt. Ein ähnlicher Einfluß des Lichtes auf die Polarität zeigt sich bei den Eizellen von Fucus und Dictyota. — Antithamnion cruciatum (eine Floridee) bildet in zerstreutem Licht aufeinanderfolgende Auszweigungen ungefähr in gekreuzter Stellung aus; bei einseitigem Lichteinfall aber stellen sie sich alle senkrecht zu den Strahlen in eine Ebene. Weitere Beispiele für solche durch einseitige Beleuchtung induzierte Dorsiventralität liefern die Zweige vieler Laubmoose, die Thalli der meisten Lebermoose und endlich die Prothallien der Farne, Gebilde, die ohne solche einseitige Lichtwirkung teils radiär, teils bilateral werden. So wird z. B. an den Farnprothallien und bei Marchantia die Oberseite durch die stärkere Beleuchtung bestimmt. Während nun bei Farnprothallien nach Umkehrung der Beleuchtungsrichtung der Neuzuwachs sich den neuen Lichtverhältnissen anpaßt, also die bisherige Oberseite zur Unterseite wird, ist der Marchantienthallus, wenn einmal die Dorsiventralität induziert ist, nicht mehr veränderlich. — Als Beispiel einer durch Beleuchtung induzierten Dorsiventralität bei höheren Pflanzen seien die Sprosse des Efeus und anderer Wurzelkletterer genannt, deren Kletterwurzeln auf der beschatteten Seite entstehen.
3. Schwerkraft. Dem Lichte können wir die Pflanze leicht entziehen; die Schwerkraft aber wirkt überall auf sie ein. Was wir da ändern können, ist nur die Richtung. Fällt die Schwerkraftrichtung mit der Richtung der Hauptwurzel und des Hauptsprosses zusammen, so bemerken wir keinerlei Einfluß: bildet sie aber einen Winkel mit diesen Organen, so treten ähnlich wie bei einseitig einfallendem Lichte Krümmungen auf (s. Geotropismus). Davon abgesehen, ist vor allem ein Einfluß der Schwerkraft auf die Polarität der Pflanzen konstatiert. Nirgends freilich in dem Maße, daß es gelänge, durch Umkehrung (Inversstellung) einer Pflanze etwa den Sproß in eine Wurzel zu verwandeln. Nicht einmal an der undifferenzierten Eizelle läßt sich durch die Schwerkraft die Polarität verändern. Sie wird fast überall durch innere Ursachen bedingt, und die Schwerkraft kann nur modifizierend eingreifen.
Werden abgeschnittene Weidenzweige in einem feuchten Raum aufgehängt, so bilden sich Wurzeln vorzugsweise nahe dem unteren Ende, und von den angelegten Knospen treiben nur die höchst stehenden aus (Fig. 263, 1). Werden die Zweige aber in verkehrter Lage aufgehängt, so sind es die gleichen (jetzt nach unten schauenden) Knospen, die austreiben, und am basalen (nach oben schauenden) Ende bilden sich die größten Wurzeln (Fig. 263, 2). Somit zeigt also der Versuch, daß in erster Linie innere Ursachen für den polaren Gegensatz bestehen. Da aber bei den invers gestellten Zweigen die Wurzelbildung erheblich nach abwärts, die Sproßbildung aufwärts verschoben ist, so muß auch die Schwerkraft mitbeteiligt sein. Nur ausnahmsweise ist es gelungen, durch Inversstellung eine vollkommene und eine dauernde Umkehrung der Polarität einer Pflanze zu erzielen. In den meisten Fällen sterben inverse Pflanzen bald ab; wo sie aber längere Zeit am Leben bleiben, zeigen sie schwere Störungen in ihrem anatomischen Bau[212].
Auch an schräg oder horizontal gelegten Zweigen macht sich ein Einfluß der Schwerkraft auf die inneren Dispositionen geltend. Letztere bringen es mit sich, daß die obersten Knospen am stärksten austreiben und sich zu Langtrieben entwickeln. Aus der Vertikallage gebrachte Zweige zeigen die basalen Knospen gefördert, die apikalen gehemmt. Bogig gekrümmte lassen die stärkst wachsenden Triebe am höchsten Punkt auftreten. In der Reben- und Obstzucht wird durch Verbiegung der Äste auf die Bildung schwächer wachsender Sprosse (Kurztriebe) hingewirkt, die erfahrungsgemäß leichter Blüten produzieren.
Fig. 263. Ein Zweig einer Weide, 1 in normaler Lage, 2 in inverser Lage im feuchten Raum treibend. Nach VÖCHTING.
4. Mechanische Einflüsse. Druck und Zug wirken in zweierlei Weise auf das Wachstum, einmal rein mechanisch, außerdem auch als Reiz. Mechanische Widerstände verlangsamen zunächst das Wachstum der Zellen und heben es schließlich ganz auf. Da aber das Flächenwachstum der Zellwand noch weiter geht, schwindet ihre Spannung schließlich ganz. Nach völliger Entspannung der Zellhaut aber wirkt der ganze Innendruck der Zelle auf die Widerlage ein, in manchen Fällen wird unter solchen Umständen der osmotische Wert des Zellsaftes noch vergrößert. So kommt es, daß Wurzeln Felsen sprengen können. Ist das Hindernis nicht zu überwinden, so veranlaßt die plastische Nachgiebigkeit der Membranen ein enges Anschmiegen an dasselbe; Wurzeln und Wurzelhaare, die in enge oder flache Hohlräume eindringen, füllen diese daher oft so vollkommen aus, als ob sie als flüssige Masse hineingegossen worden wären. — Von einem starken mechanischen Zug sollte man erwarten, daß er durch Unterstützung und Förderung der Dehnung das Längenwachstum beschleunige. Tatsächlich macht sich aber eine Reizwirkung geltend, der Zug hat zunächst geradezu eine Verzögerung des Wachstums zur Folge, und erst später treten Beschleunigungen bis 20% auf.
Von anderen Reizwirkungen mechanischer Einflüsse nennen wir noch folgende: An gekrümmten Wurzeln treten Seitenwurzeln ausschließlich auf den Konvexseiten auf; die Ursache liegt wahrscheinlich in den Spannungsverhältnissen, die an den antagonistischen Seiten bestehen (Fig. 264). — Die Anlage der Haustorien von Cuscuta und die Ausbildung der Saugnäpfe an den Ranken mancher Parthenocissus-Arten (Fig. 207) wird durch Berührungsreiz ausgelöst.
Steigern sich mechanische Einflüsse bis zur Verwundung, so treten entweder einfache Heilungserscheinungen (S. 140) oder Restitutionen (S. 245) auf.
Fig. 264. Junge Lupine mit bogig gewachsener Hauptwurzel. Die Seitenwurzeln s ausschließlich auf den Konvexflanken entwickelt. Nach NOLL.
5. Stoffliche Einflüsse. Die Gegenwart der nötigen Nährstoffe in genügender Menge ist ebenso wie die Abwesenheit von Giften formale Bedingung für jedes Wachstum. Wenn auch, wie wir wissen, jeder einzelne Nährstoff unentbehrlich ist, durch eine Überfülle der anderen nicht ersetzt werden kann, so darf man doch für bestimmte Vorgänge einem einzelnen eine besondere Wichtigkeit zuschreiben. — Da die Streckung ganz überwiegend auf Wassereinlagerung beruht, so ist die Bedeutung der Wasserzufuhr für die wachsende Pflanze ohne weiteres einleuchtend. Nur die turgeszente Pflanze wächst, und der Wassergehalt des Bodens beeinflußt weitgehend die Größe der Pflanze und ihrer Zellen. Im trockenen Boden entstehen Zwerge[213]. Manche Pflanzen aber besitzen Wasserspeicher und sind dadurch etwas unabhängiger von direkter Wasseraufnahme; sie wachsen auf Kosten des gespeicherten Wassers. Vielfach kann auch das Wasser älteren Teilen entnommen werden, die dann vertrocknen, während an der Spitze Wachstum stattfindet; so bei der im Keller treibenden Kartoffel. Ganz anders wie der Wassergehalt des Bodens wirkt der Feuchtigkeitsgehalt der Luft. Durch ihn wird Form und anatomischer Bau weitgehend geändert. In feuchter Atmosphäre entwickeln sich lange Internodien und lange Blattstiele, die Blattfläche wird groß, aber sie bleibt dünn, und ihr Rand ist wenig ausmodelliert, die Behaarung tritt zurück. Die Gewebedifferenzierung ist sehr gering. Es besteht also in mehrfacher Hinsicht Annäherung an die etiolierte Pflanze. Eine lokale Überfüllung der Pflanze mit Wasser, wie sie nach Hemmung der Transpiration z. B. durch Überzüge von Paraffinöl auftritt, führt zur Anschwellung der Zellen und somit zur Intumeszenzbildung. Umgekehrt wird durch trockene Luft die anatomische Differenzierung sehr gefördert; die Kutikula wird verstärkt, Kollenchym, Sklerenchym und Gefäße werden vermehrt, kurz es entstehen vielfach Abänderungen, die in feuchter Luft auf Transpirationssteigerung, in trockener auf Transpirationshemmung hinauslaufen, also zweckmäßige Abänderungen. Anpassungen.
Eine sehr auffallende Reizwirkung wird durch die dauernde Berührung mit flüssigem Wasser bei denjenigen Pflanzen erzielt, die eine solche überhaupt ertragen können; zweifellos handelt es sich da freilich nicht um eine einfache stoffliche Wirkung des Wassers, sondern um eine kombinierte Wirkung vieler Faktoren: neben dem Wasserüberfluß dürfte z. B. die Aufhebung der Transpiration, doch auch die Änderung der Beleuchtung und der Sauerstoffzufuhr wichtig sein.
Amphibische Pflanzen, d. h. solche, die befähigt sind, sowohl auf dem Lande wie im Wasser zu leben, entwickeln im Wasser oft ganz andere Formen als in der Luft. Dies tritt zumal in der Gestalt der Blätter hervor, die im Wasser häufig lineal und sitzend oder aber fein zerschlitzt, an der Luft dagegen gestielt und mit breiter Spreite ausgebildet werden (vgl. Fig. 140). Aber auch Blattstiele und Internodien zeigen im Wasser oft ein anderes Wachstum als in der Luft, und es erinnert ihr Verhalten im Wasser an die Überverlängerung im Finstern. Das ist besonders der Fall bei untergetauchten Wasserpflanzen, von denen gewisse Teile die Oberfläche erreichen müssen (Stengel von Hippuris, Blattstiele von Nymphaea). Diese Pflanzenteile sind durch verschieden starke Streckung unter Wasser imstande, ihre Länge der Höhe des über ihnen stehenden Wasserspiegels anzupassen, in flachem Wasser kurz zu bleiben, in tiefem sehr lang zu werden.