ZWEITER TEIL Spezielle Botanik. (continued 3)
Reading edition
4. Ordnung. Tremellineae, Zitterpilze. Basidien der Länge nach geteilt (Fig. 399). Die Fruchtkörper der Zitterpilze sind von gallertartiger Beschaffenheit, lappig oder runzlig gefaltet und auf ihrer Oberseite mit dem Basidienhymenium überkleidet. Nur wenige Gattungen, saprophytisch in faulenden Baumstämmen, aus deren Oberflächen die Fruchtkörper hervorkommen.
5. Ordnung. Exobasidiineae. Die Fruchtkörperbildung fehlt hier, vielmehr entstehen die keulenförmigen, ungeteilten, an ihrem Gipfel vier Sporen auf dünnen Sterigmen tragenden Basidien frei aus den Myzelfäden, so bei Exobasidium Vaccinii, einem auf Ericaceen, besonders Preißel- und Heidelbeeren auftretenden Pilz, dessen Myzel Auftreibungen der befallenen Pflanzenteile verursacht. Die Basidien werden in Lagern unter der Epidermis gebildet und brechen durch diese nach außen hervor (Fig. 410). Als Nebenfruktifikationen treten bei dieser Gattung, wie bei manchen anderen, Konidien auf, die als schmal spindelförmige Zellen vom Myzel abgegliedert werden und der Basidienbildung vorausgehen.
6. Ordnung. Hymenomycetes[373]. Die Basidien sind ungeteilt und tragen an der Spitze auf dünnen Sterigmen vier Sporen (Fig. 411 sp). Sie werden an Fruchtkörpern erzeugt, die durch Verflechtung von Hyphen entstehen, und sind in Schichten oder Hymenien angeordnet. An der Zusammensetzung dieser beteiligen sich die Saftfäden oder Paraphysen (Fig. 411 p) und vielfach auch die ebenfalls sterilen Zystiden (c), einzellige Schläuche, die sich durch größeren Umfang auszeichnen.
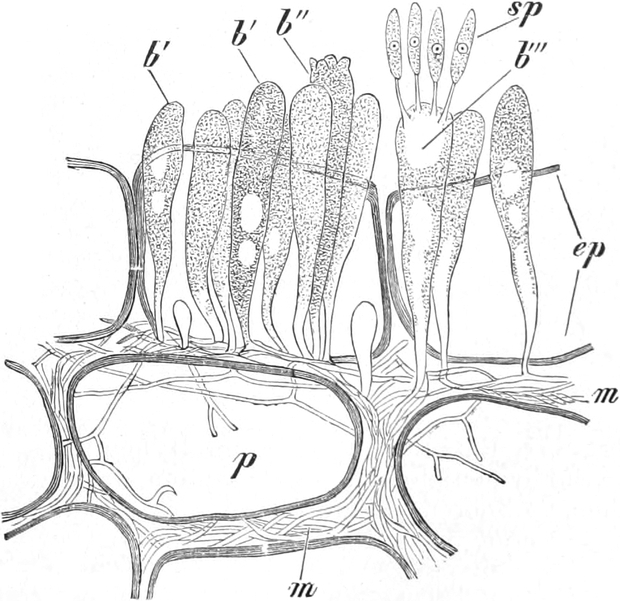
Fig. 410. Exobasidium Vaccinii. Querschnitt durch die Stengelperipherie von Vaccinium. ep Epidermis, p Rindenparenchym, m Myzelfäden in den Interzellularräumen, b die nach außen hervorbrechenden Basidien, b′ noch ohne Sterigmen, b″ Anlage der Sterigmen, b‴ mit vier Sporen. Vergr. 620. Nach WORONIN.
Die vier Sporen werden vermittels des osmotischen Druckes der Basidien von den Sterigmen nacheinander eine kurze Strecke weit abgeschleudert; sie haften überall leicht an. Ihr freies Herabfallen von den Hymenien wird aber durch die Paraphysen begünstigt, die die Basidien voneinander trennen. Die Zystiden sind nach KNOLL Wasser und Schleim abscheidende Organe. In einzelnen Fällen mögen sie auch noch andere Funktionen erfüllen, so bei Coprinus-Arten das Auseinanderhalten der Lamellen und somit die Sicherung des Sporenfalles[388].
Da bei den Hymenomyceten wie auch bei den ihnen nächst verwandten Ordnungen besondere Sexualorgane fehlen, die Basidien aber den Schläuchen der Askomyceten entsprechen und anfangs wie diese zwei miteinander kopulierende Kerne aufweisen, so entsteht die Frage, ob in dem Entwicklungsgang beider Pilzgruppen noch weitere Homologien bestehen, und wie bei ersteren die Zweikernigkeit der Basidienanlage zustande kommt[389].
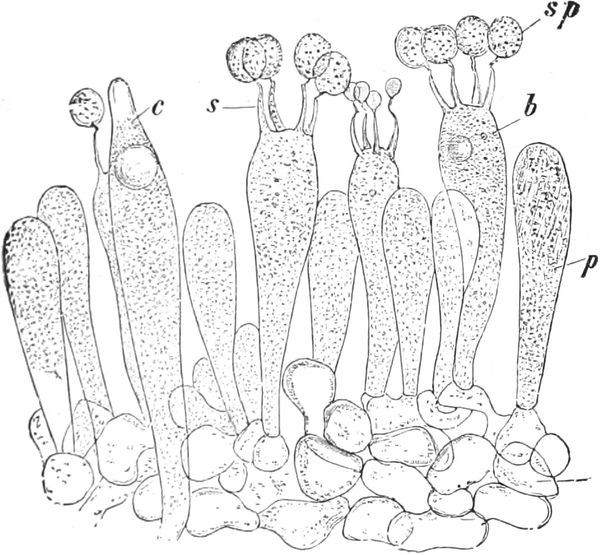
Fig. 411. Russula rubra. Teil des Hymeniums. sh Subhymeniale Schicht, b Basidien, s Sterigmen, sp Sporen, p Paraphysen, c ein Zystide. Vergr. 540. Nach STRASBURGER.
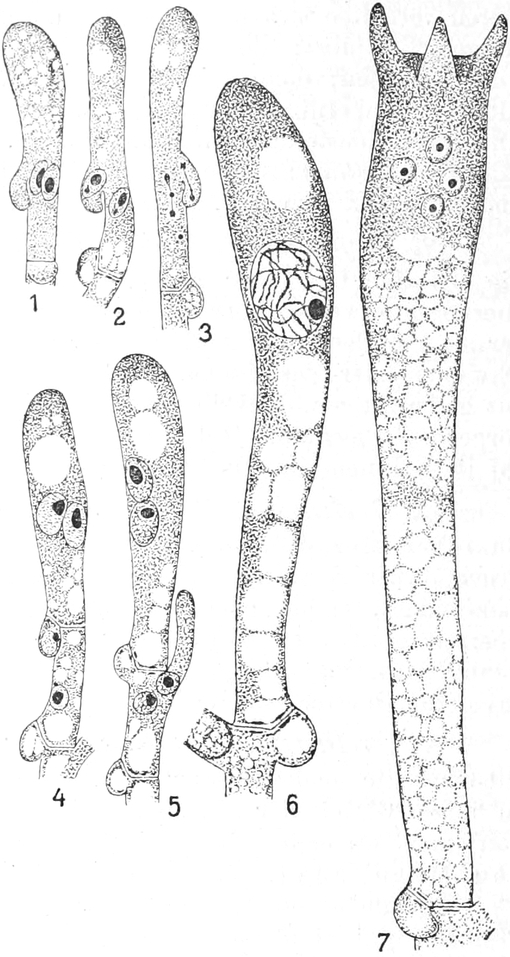
Fig. 412. Armillaria mucida, Schnallenbildung und Basidienentwicklung. 1 Beginn der Schnallenbildung in der zweikernigen Endzelle. 2 Ein Zellkern nach der Schnallenausbuchtung gerückt. 3 Konjugierte Kernteilung. 4 Schnallenzelle und Stielzelle abgegrenzt von der Basidienanlage. 5 Fusion dieser beiden Zellen. 6 Die beiden Kerne der Basidienanlage zu einem vereinigt. 7 Junge Basidie mit den vier Basidiosporen, oben mit vier Sterigmenanlagen (eine davon verdeckt). Nach H. KNIEP.
Neuere Untersuchungen, besonders von KNIEP, ergaben, daß wohl bei den meisten Hymenomyceten die aus den Basidiosporen hervorgehenden Myzelien aus einkernigen Zellen bestehen, daß aber dann früher oder später schon vor und unabhängig von der Fruchtkörperbildung weiterhin Zweikernigkeit sich einstellt, daß die Kernpaare in den Zellen sich konjugiert weiterteilen und daß diese Paarkernigkeit mit der eigenartigen Bildung von Myzelschnallen Hand in Hand geht bis zu den Anlagen der Basidien. Nur wenige Hymenomyceten haben vielkernige Hyphenzellen und erst kurz vor der Basidienbildung paarkernige. Die Myzelschnallen entstehen sowohl an den langzelligen vegetativen Hyphen als auch an den kürzeren und dickeren Hyphen, aus denen die Hymenien hervorgehen, in gleicher Weise als seitliche, hakenförmig nach unten gerichtete, kurze Ausstülpungen, je eine etwa in der Mitte einer endständigen Hyphenzelle (Fig. 412, 1). Hierauf wandert der eine der beiden Kerne zum Teil in diese Ausstülpung ein und teilt sich hier (2, 3); gleichzeitig teilt sich auch der andere Kern, zwischen dessen Tochterkernen darauf eine Querwand dicht unterhalb der Schnalle entsteht. In die Endzelle des Fadens wandert auch der obere Tochterkern des Schnallenkerns ein, während der untere in der Schnalle selbst verbleibt. Diese grenzt sich durch eine Querwand von der Endzelle ab, fusioniert mit der tieferstehenden Zelle und läßt ihren Kern in sie übertreten. Durch diese Schnallenbildung erhalten also beide Fadenzellen ihre neuen Kernpaare als Abkömmlinge des ursprünglichen Kernpaares. Vielleicht liegt die Bedeutung dieses umständlichen Vorganges in der Sicherung einer solchen Verteilung der Schwesterkerne auf zwei getrennte Fadenzellen. Die zweikernige Endzelle wird zur Anlage der Basidie. Beide Kerne kopulieren miteinander und teilen sich dann in vier Sporenkerne (Fig. 412, 5, 6, 7). Wie bei den Askomyceten vollzieht sich also auch bei den Basidiomyceten der Befruchtungsvorgang in zwei Stufen, Zellkopulation bei der ersten Schnallenbildung und Kernkopulation in den Basidien.
Die Schnallenbildung entspricht nach KNIEP genau der Hakenbildung vieler Askomyceten, bei denen sie aber nur auf die askogenen Hyphen beschränkt ist.
KNIEP hat den Nachweis erbracht, daß die Myzelien wohl der meisten Hymenomyceten heterothallisch sind, wie bei Mucorineen (S. 382). Schnallenbildung und als Folge davon Paarkernigkeit, ferner Fruchtkörperbildung tritt nur ein, wenn sexuell verschieden differenzierte Myzelien miteinander, jedenfalls durch Anastomosen, in Verbindung treten. Die beiden Kerne einer jeden Myzelzelle entstammen dann verschiedenen Myzelien. Diese sexuelle Differenzierung wird nach KNIEPs Feststellung bei Aleurodiscus polygonius bei der ersten Reduktionsteilung in der Basidie vollzogen, so daß von ihren vier Basidiosporen zwei das eine Geschlecht (+), zwei das andere (–) erhalten.
Nicht alle Basidiomyceten sind getrenntgeschlechtlich. Es gibt auch solche mit zweikernigen homothallischen Myzelien, die Fruchtkörper mit normalen Basidien bilden. Die Paarkernigkeit der Hyphenzellen stellt sich dann an ein und demselben Einspor-Myzelium ein, bei Hypochnus nach KNIEP bereits durch Teilung des Basidiosporenkerns.
Das Paarkernmyzel bezeichnet die diploide Phase, die haploide beginnt in der Basidie, endigt unbestimmt mit dem Beginn der Schnallen, bei Hypochnus aber bereits mit dem einkernigen Anfangsstadium der Basidiospore. Der Generationswechsel ist also infolge Unterdrückung der Sexualorgane nicht mehr bei allen Vertretern in gleicher Weise ausgeprägt.
Übrigens gibt es auch einzelne sexuell reduzierte Basidiomyceten (z. B. Coprinus fimetarius), bei denen die Schnallenbildung unterbleiben kann und die Zellen der aus den Sporen hervorgehenden Myzelien stets einkernig sind. So entstehen haploide Fruchtkörper, in denen die Kernverschmelzung in der einkernigen Basidienanlage ausfällt, trotzdem aber Basidiosporen erzeugt werden.
Die meisten Hymenomyceten leben mit ihrem Myzelium im humushaltigen Boden der Wälder oder im faulenden Holz, in absterbenden Baumstämmen und erheben ihre Fruchtkörper, die gemeiniglich als Schwämme bezeichnet werden, über die Oberfläche des Substrats. Das Myzel der im Boden vegetierenden Formen breitet sich an der Peripherie immer weiter aus und nimmt eine von Jahr zu Jahr immer größer werdende, ringförmige Zone ein. Infolgedessen erscheinen dann auch die jährlich hervorkommenden Schwämme bei ungestörter Entwicklung in Ringen angeordnet, die vom Volk Hexenringe genannt werden. Weniger zahlreiche Hymenomyceten vegetieren parasitisch in der Rinde und dem Holze von Holzgewächsen.
Die fortschreitend reichere Gestaltung der mannigfachen Basidienfruchtkörper dient zur Einteilung der Hymenomyceten.
1. Die Thelephoraceen erzeugen einfach gestaltete Fruchtkörper meist von korkig lederartiger Beschaffenheit; sie bilden auf Baumstümpfen teils flache Krusten von rundlichem oder getapptem Umriß, und das Basidienhymenium überzieht die glatte Oberseite dieser Krusten; oder die flachen Fruchtkörper heben sich in horizontaler Richtung vom Substrat ab, bilden halbkreisförmige, oft dachziegelartig gruppierte Hüte, und das Hymenium ist auf ihrer Unterseite entwickelt, so bei dem an Laubholzstämmen häufigen Stereum hirsutum. Eigenartige trichterförmige schwarze Fruchtkörper hat Craterellus cornucopioides, die Totentrompete, ein wohlschmeckender Speisepilz.
2. In der Gruppe der Clavariaceen haben die von dem Hymenium an ihrer Oberfläche bedeckten Fruchtkörper die Form von fleischigen Keulen oder sind korallenartig verzweigt. Die größeren, reich verästelten Formen liefern minderwertige Speiseschwämme, so Clavaria flava mit gelbem Fruchtkörper, und Clavaria Botrytis (Fig. 413), von blaßrötlicher Farbe, beide als Hahnenkamm oder Korallenschwamm bezeichnet, ferner der krause Ziegenbart, Sparassis crispa, auf Sandboden in Nadelwäldern auftretend, mit blattförmigen, reich verzweigten Ästen, bis 1⁄2 m im Durchmesser erreichend.
3. Die Hydnaceen oder Stachelschwämme besitzen Fruchtkörper mit stachelartigen Auswüchsen, auf denen die Hymenien als Überzug entwickelt werden. Die einfachsten Hydneen haben krustenförmige Fruchtkörper, auf deren Oberseite diese Stacheln stehen, andere dagegen gestielte, hutförmige, fleischige Fruchtkörper, die auf der Hutunterseite die abwärts gerichteten Stacheln tragen. Zu letzteren gehören verschiedene eßbare Schwämme, so Hydnum imbricatum, der Habichtsschwamm, in Kiefernwäldern, mit braunem, oben schwärzlich beschupptem, bis 15 cm breitem Hut, ferner Hydnum repandum, der Stoppelschwamm (Fig. 414) mit gelblichem Hut.
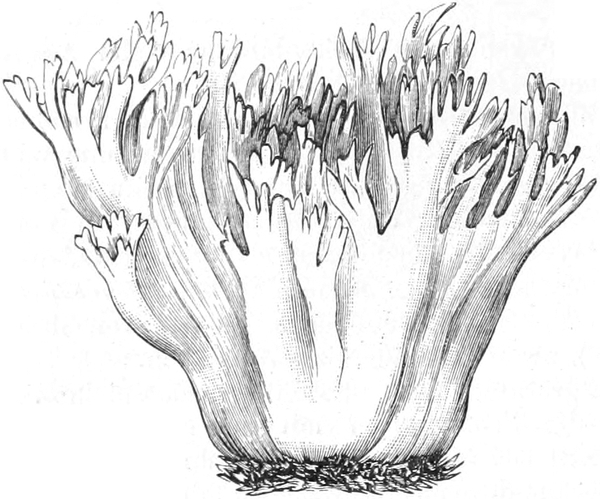
Fig. 413. Clavaria Botrytis. Verkl.
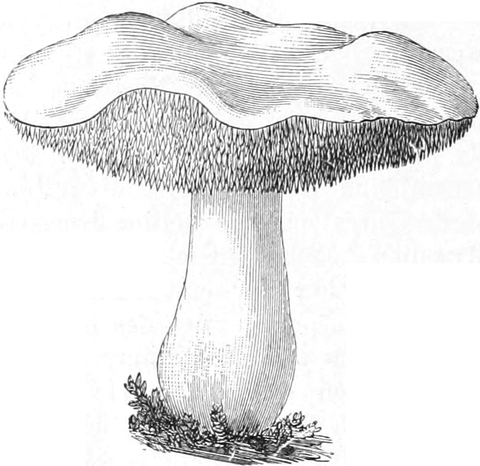
Fig. 414. Hydnum repandum. Verkl.
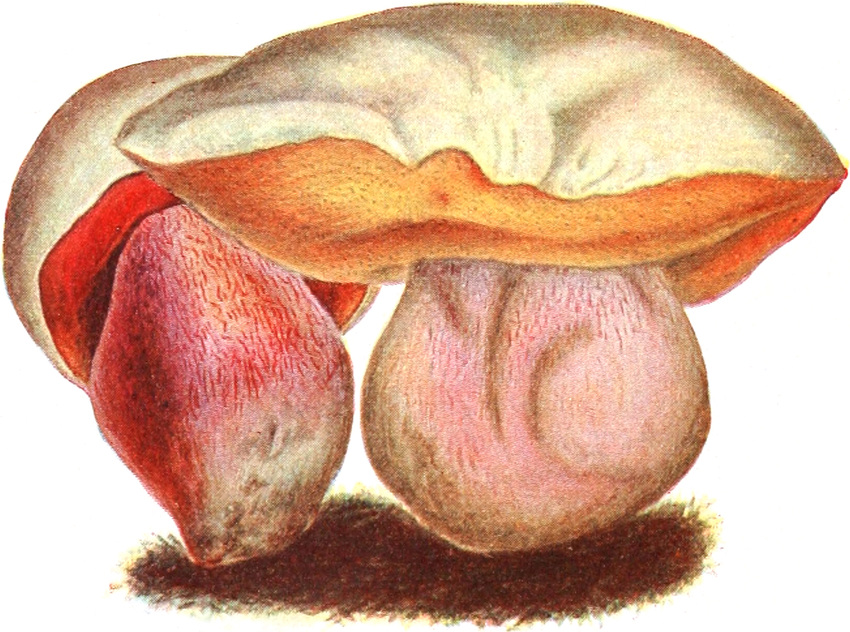
Fig. 415. Boletus Satanas, Satanspilz. 1⁄2 nat. Gr. Nach KROMBHOLZ. Giftig. Verkl.
4. Bei den artenreichen Polyporaceen oder Löcherschwämmen besitzen die gestielten oder sitzenden Hüte in der Regel auf ihrer Unterseite röhrenförmige Vertiefungen oder tiefgewundene Gänge oder dicht zusammenstehende Röhrchen, und das Basidienhymenium ist in diesen auf der Innenseite entwickelt. Hierher gehört die Gattung Boletus, Röhrling, mit großen, fleischigen, auf Waldboden auftretenden, gestielten Hüten, deren Unterseite mit einer dicken Schicht von feinen Röhrchen bekleidet ist. Die Arten sind teils vorzügliche Speisepilze, so u. a. B. edulis, der Steinpilz, B. badius, der Maronenpilz, B. elegans, der schöne Röhrling, und B. luteus, der Butterpilz, teils aber sehr giftig, wie der Satanspilz, B. Satanas (Fig. 415), mit fahlweißlichem, bis 20 cm breitem Hut, gelb bis purpurrot gefärbtem und mit roter Netzzeichnung versehenem Stiel und erst blutroter, dann orangeroter Hutunterseite. Wegen seines bitteren Geschmacks ungenießbar ist der dem Steinpilz ähnliche Gallenröhrling, B. felleus, der sich durch hellrosa Röhren statt weißer von ihm unterscheidet. Von den zahlreichen Arten der Gattung Polyporus ist offizinell der südeuropäische, an Lärchen vorkommende Polyporus officinalis, dessen unregelmäßig knollige, weiße Fruchtkörper einen bitteren harzartigen Bestandteil enthalten. Verwandt mit Polyporus ist der ebenfalls offizinelle Feuer- oder Zunderschwamm, Fomes fomentarius. Sein Myzelium lebt parasitisch in Laubbäumen, besonders Buchen, und erzeugt große konsolförmige, bis 50 cm breite und 35 cm dicke, mehrjährige Fruchtkörper mit harter, grauer Rinde und wergartiger, den Zunderschwamm liefernder Innenmasse. Auf der Unterseite stehen die engen Hymeniumröhren in übereinander lagernden Jahresschichten. Der ähnliche Fomes igniarius, unechter Zunderschwamm (Fig. 416), besonders an Eichen auftretend, ist rotbraun gefärbt, viel härter und liefert nur einen schlechten Zunder.
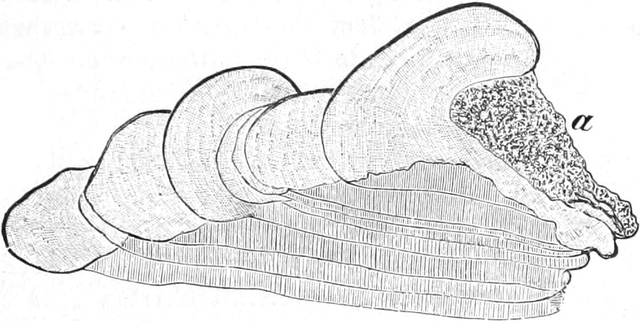
Fig. 416. Fomes igniarius. Durchschnitt durch einen mehrjährigen Fruchtkörper mit Zuwachszonen. a Befestigungsstelle des halbkreisförmigen Hutes. 1⁄2 nat. Gr.
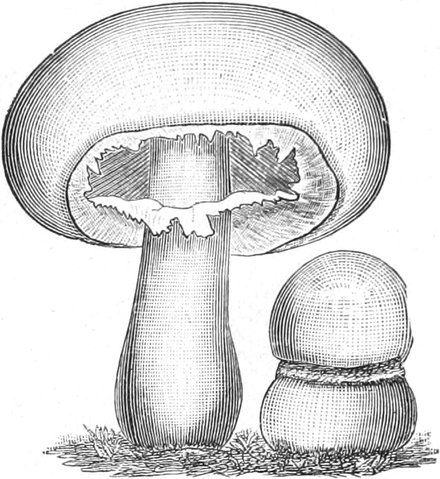
Fig. 417. Psalliota campestris. Champignon, rechts junger Fruchtkörper. Verkleinert.
Manche Polyporeen sind sehr schädliche Parasiten der Waldbäume, so Fomes annosus, an Kiefern und Fichten. Eine sehr schädliche saprophytische Art ist Merulius lacrymans, der Hausschwamm[390], dessen Myzelium in feuchtem Bauholz, in erster Linie in Nadelholz, vegetiert und dieses zerstört; an der Oberfläche des Holzes und an Mauerwerk bildet sein Myzel große grauweiße Watten mit derben, sich verzweigenden Strängen, die neben gewöhnlichen Hyphen siebröhrenartige Hyphen zur Leitung von Wasser und Nährstoffen und verdickte Faserhyphen enthalten. Die Hyphen zeichnen sich durch schnallenförmige Verbindungen ihrer aufeinanderfolgenden Zellen aus. Die aus Ritzen hervorkommenden, im jungen Zustand weißen, unregelmäßig lappigen Fruchtkörper tragen das Hymenium auf ihrer grubigen Oberfläche und sind bei der Reife mit rostbraunen Sporenmassen bedeckt. Trockenlegung und gute Durchlüftung der infizierten Räume ist das sicherste Mittel zur Bekämpfung des Hausschwammes. Nahe verwandt mit ihm ist der in Wäldern vorkommende Merulius silvester.
5. Als artenreichste Gruppe sind schließlich die Agaricaceen oder Blätterschwämme zu nennen, deren Hüte auf der Unterseite radiale Lamellen tragen, die mit dem Hymenium überzogen sind. Die Fruchtkörperanlagen sind rundliche Körper, in denen sich bald der Stiel und der Hut differenzieren. Bei vielen Blätterpilzen spannt sich eine dünne Hyphenhaut (Velum) in dem jungen Fruchtkörper vom Hutrand quer zum Stiel; sie reißt später ein und kann als ringförmiger, festsitzender oder verschiebbarer Hautlappen (Annulus) am Stiele verbleiben (Fig. 417). Manche Arten besitzen auch eine oben am Stiel hängende Haut (Manschette, Armilla), die sich unter dem Hut von der Stieloberfläche ablöst. Bei Amanita (Fig. 418–420) und Verwandten ist eine gemeinsame Hülle vorhanden, die am Grunde des Stiels als Volva und auf dem Hut in weißen Fetzen zurückbleibt.
Manche Blätterschwämme Mitteleuropas werden als vorzügliche Speiseschwämme geschätzt, so vor allem der auch in Kultur genommene Champignon oder Egerling, Psalliota campestris (Fig. 417), mit weißlichem Hut und erst weißen, dann rosenroten, zuletzt braunschwarzen Lamellen; ferner der Pfifferling oder Eierschwamm, Cantharellus cibarius, mit dottergelbem, kreiselförmigem Hut; der Reizker, Lactaria deliciosa, mit rotgelbem Hut und rotgelbem Milchsaft in besonderen Hyphenschläuchen; Lactaria volema, der Brätling, mit rotbraunem Hut, dickem Stiel und weißem Milchsaft; Tricholoma equestre, der Grünling, mit braungelber Hutoberseite, sonst schwefelgelb gefärbt; der Parasolschwamm, Lepiota procera, mit weißem braunbeschupptem Hut; der Kaiserling, Amanita caesarea, mit orangefarbigem, oben anfangs einige dicke lose weiße Hautfetzen tragendem Hut und gelben Lamellen. Eßbar sind auch die bräunlichen Fruchtkörper des Hallimasch, Armillaria mellea, der als sehr verderblicher Baumparasit an Laub- und Nadelhölzern auftritt; sein Myzel zeichnet sich aus durch Bildung photogener Substanzen, die das Leuchten des infizierten Holzes im Dunkeln bedingen[293]. Bemerkenswert sind ferner die als Rhizomorphen bezeichneten Dauerzustände seines Myzels, schwarze verzweigte Stränge unter der Rinde oder zwischen den Wurzeln der Nährbäume.
Verhältnismäßig gering ist die Zahl der giftigen Blätterschwämme. In erster Linie sind zu nennen der Fliegenschwamm, Amanita muscaria (Fig. 418), mit weißen Lamellen; die oft mit dem Champignon verwechselten, tödlich wirkende Gifte enthaltenden Knollenblätterschwämme, nämlich die besonders giftige, auf der Hutoberfläche heller oder dunkler grünlich gefärbte A. phalloides (Fig. 419), die rein weiße A. verna und die gelblichweiße A. mappa (Fig. 420), alle drei mit weißen Lamellen und mit dickknolligem Stielfuß, der bei den zwei erstgenannten Arten eine große gelappte Scheide trägt, bei der dritten Art aber nur kantig gesäumt ist; der Speiteufel, Russula emetica, mit rötlichem Hut und weißen Lamellen; der Giftreizker, Lactaria torminosa, mit rotbraunem, zottigem Hut und weißem Milchsaft.
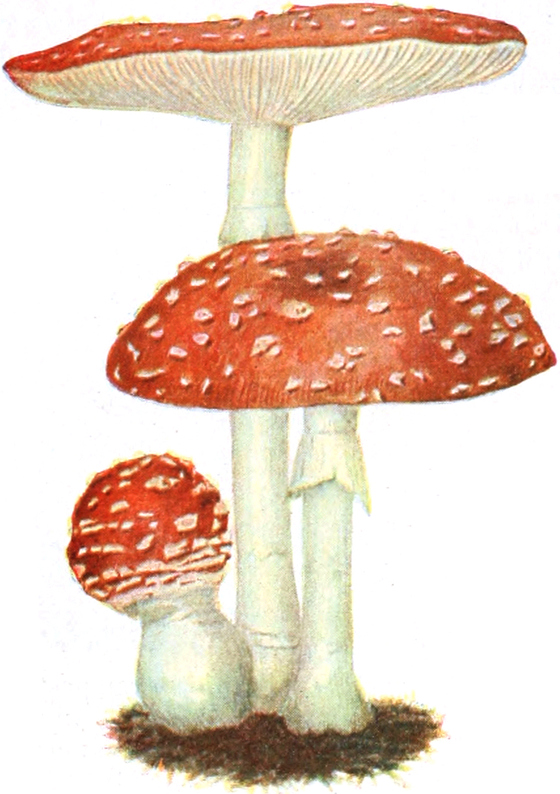
Fig. 418. Amanita muscaria, Fliegenpilz. 1⁄2 nat. Gr. — Giftig.
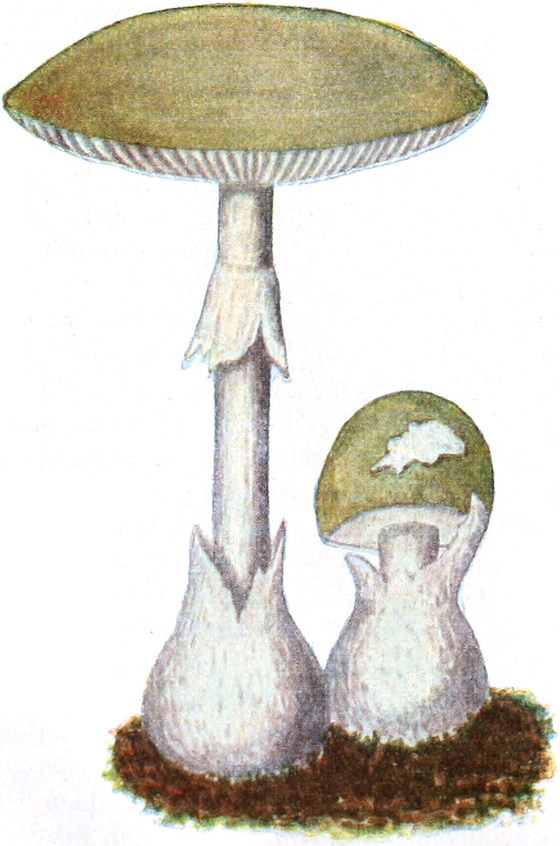
Fig. 419. Amanita phalloides. Grünlicher Knollenblätterschwamm. 1⁄2 nat. Gr. — Sehr giftig.
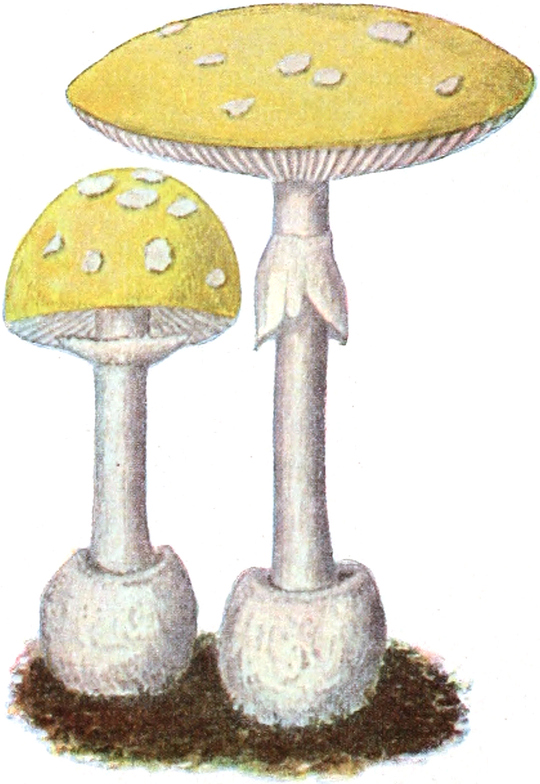
Fig. 420. Amanita mappa. Gelber Knollenblätterschwamm. 1⁄2 nat. Gr. — Giftig.
Ökologisch sehr interessant ist die südbrasilianische Agaricinee Rozites gongylophora, deren Myzel nach A. MÖLLER von den Blattschneiderameisen in ihren Nestern auf herbeigeschleppten und zerkauten Blattstückchen regelrecht kultiviert wird. Das Myzel erzeugt hier kugelige, dicht mit Plasma erfüllte Anschwellungen seiner Hyphenenden, die sog. Kohlrabiköpfchen, welche den Ameisen als Nahrung dienen. Die Ameisen verhindern die Entwicklung der Konidien, die als Nebenfruktifikation dem Pilze eigen sind und nur bei Kultur des Myzels ohne Ameisen gebildet werden, erhalten also den Pilz in ihren Nestern stets in seinem vegetativen Zustande. Die Fruchtkörper finden sich nur selten auf den Nestern; sie haben in ihrer Form Ähnlichkeit mit denen des Fliegenschwamms, zu dessen Verwandtschaft Rozites gehört. Im tropischen Asien wird nach HOLTERMANN das Myzel von Agaricus Rajab von Termiten in ihren Nestern kultiviert[391].
Offizinell: Fomes fomentarius, liefert Fungus Chirurgorum (Pharm. germ. austr.). — Polyporus officinalis (= Boletus laricis) Lärchenschwamm liefert Agaricus albus (Pharm. helv.) oder Fungus Laricis (Pharm. austr.), Agaricinum (Pharm. germ.) und Acidum agaricinum (Pharm. helv.).
7. Ordnung. Gasteromycetes, Bauchpilze[373]. Die Gasteromyceten haben geschlossene Fruchtkörper, die sich erst nach der Sporenreife öffnen, wobei die als Peridie bezeichnete äußere Hyphenrinde in charakteristischer Weise aufplatzt. Die von der Peridie umschlossene sporenbildende Innenmasse wird insgesamt als Gleba bezeichnet. Die Gleba ist von zahlreichen Kammern durchsetzt, die von dem Basidienhymenium ausgekleidet werden, oder sie ist erfüllt von locker verflochtenen Hyphen, deren Zweige in Basidien endigen.
Das Myzel lebt saprophytisch im Humusboden der Wälder und Wiesen. Die Fruchtkörper aber erheben sich über die Oberfläche. Nur die Gruppe der Hymenogastreen besitzt unterirdische, trüffelähnliche Fruchtkörper.
Verhältnismäßig einfach gebaut ist der Fruchtkörper von Scleroderma vulgare, dem Hartbovist, dessen breitkugelige, meist 5 cm dicke Basidienfrucht eine weißlich braune, lederartige, am Scheitel rissig gefelderte Peridie besitzt (Fig.421, 1). Die im reifen Zustande schwarze Gleba ist von zahlreichen sterilen Adern durchzogen und erfüllt mit birnförmigen Basidien, die vier sitzende kugelige Sporen tragen (Fig. 421, 2). Der Hartbovist gilt als giftig und wird zuweilen mit Trüffeln verwechselt.
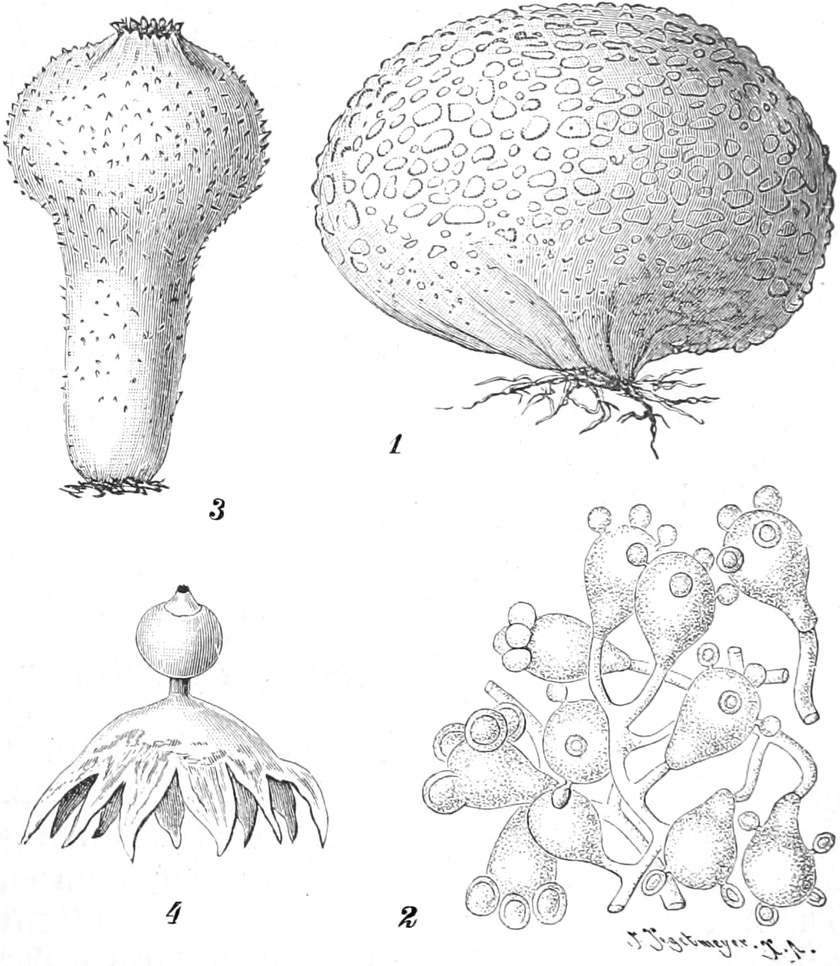
Fig. 421. 1 Scleroderma vulgare, Fruchtkörper. 2 Basidien aus demselben. Nach TULASNE. 3 Lycoperdon gemmatum. 4 Geaster granulosus. 1, 3, 4 in nat. Gr. 2 vergrößert.
Die Gattungen Bovista und Lycoperdon (Fig. 421, 3), Boviste und Stäublinge, haben ebenfalls kugelige, bei letzterer Gattung auch gestielte, anfangs weißliche, später bräunliche Fruchtkörper. Sie erreichen bei dem Riesenbovist Lycoperdon Bovista sogar bis 1⁄2 m Durchmesser. Ihre Peridie ist in Form von zwei Schichten entwickelt, von denen sich die äußere bei der Reife gewöhnlich ablöst und die innere sich am Scheitel öffnet. Die Kammern der Gleba werden hier von einem regelmäßigen Hymenium aus Basidien ausgekleidet. Eine Eigentümlichkeit der Boviste besteht ferner in dem Auftreten von Capillitiumfasern in den Kammern der Gleba; das sind braune dickwandige, verästelte Hyphen, welche die Auflockerung der Sporenmasse besorgen. Die jungen, noch weißen Boviste sind eßbar, die reifen dagegen enthalten Harnstoff.
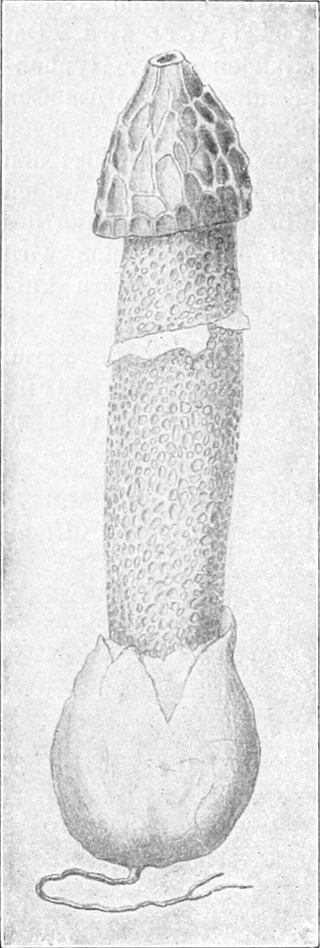
Fig. 422. Ithyphallus impudicus. 1⁄2 nat. Gr.
Bei Geaster (Fig. 421, 4), Erdstern, ist die Peridie der Fruchtkörper ebenfalls als doppelte Hülle ausgebildet. Die äußere Hülle breitet sich in sternförmigen Lappen aus, die innere öffnet sich am Scheitel mit einem Loch.
Die höchste Ausbildung erreichen die Phallaceen[392], als deren bekanntester Vertreter Ithyphallus impudicus, die Stinkmorchel, in Wäldern Deutschlands einheimisch, zu nennen ist. Dieser Pilz galt vielfach als giftig. Früher wurde er zu Gichtsalben verwendet. Sein Fruchtkörper ähnelt den echten, zu den Diskomyceten gehörenden Morcheln, hat aber eine ganz andere Entwicklungsgeschichte. Er ist etwa 15 cm hoch, hat einen langen, innen hohlen, netzförmig gekammerten, weißen Stiel und einen glockenförmigen, mit der braungrünen, im reifen Zustand zu Schleim verflüssigten, sporenhaltigen Glebamasse überzogenen Hut, unter dem am Stiel noch die Reste eines zarthäutigen Schleiers (Indusium) haften, der den Hut auf seiner Innenseite anfangs bedeckte (Fig. 422). Der junge Fruchtkörper bildet einen eiförmigen weißen Körper (Hexenei oder Teufelsei genannt) und wird von einer doppelwandigen Hülle mit gallertartiger Mittelschicht ganz umschlossen. Im Innern der Hülle oder Peridie (auch Volva genannt) differenziert sich das Hyphengewebe in den axilen Stiel und in den glockenförmigen Hut. Im Umkreise des Hutes wird die Gleba ausgebildet. Bei der Reife streckt sich der Stiel rasch in die Länge, sprengt dabei die an seiner Basis als Scheide zurückbleibende Hülle und hebt den glockenförmigen Hut mit der Gleba empor. Letztere erzeugt aasartig riechende Stoffe und lockt dadurch Aasinsekten an, die die Sporen verbreiten.
Die Flechten sind symbiotische Organismen; sie bestehen aus Fadenpilzen, und zwar aus Askomyceten, nur in ganz vereinzelten Fällen aus Basidiomyceten, die mit einzelligen oder fädigen Algen, Cyanophyceen oder Chlorophyceen, gemeinsam vegetieren und so einen eigenartigen zusammengesetzten Thallus, ein Konsortium, bilden. Die Flechtenalgen und die Flechtenpilze sind im natürlichen System in die Gruppen der nächstverwandten Algen und Pilze einzureihen. Doch besitzen die Flechten untereinander so viel Übereinstimmendes in Bau und Lebensweise und haben sich als Konsortien phylogenetisch weiter entwickelt, daß sie zweckmäßiger als besondere Klasse behandelt werden.
Der Pilz ernährt sich von den durch die assimilierenden Algenzellen erzeugten organischen Stoffen; er umspinnt mit seinen Hyphen die Algen (Fig. 423), kann aber auch Haustorien in sie hinein entsenden und als Parasit sogar ihren Inhalt aufzehren, auch als Saprophyt abgestorbene Algenzellen ausnutzen. Andererseits gewährt der Pilz den Algen bestimmte Vorteile, liefert ihnen die anorganischen Stoffe und Wasser, wahrscheinlich auch organische Verbindungen.
Der größere Vorteil in dieser mutualistischen Symbiose mag auf seiten des Pilzes liegen, vor allem bei solchen Flechten, die auf sterilem, jeglicher organischen Stoffe barem Gestein wachsen, während der Pilz bei Humusboden- oder Baumrindenbewohnern wenigstens einen Teil seiner Nahrung saprophytisch aus dem Substrat beziehen kann. Wenn auch die Algen in manchen Fällen vom Pilz stärker ausgenützt werden, so erfahren sie doch eine ausgiebige Vermehrung, und beide können infolge ihres Zusammenlebens auch an Orten gedeihen, wo weder Pilz noch Alge für sich allein leben könnte.
Den Flechten eigene Stoffwechselsekrete sind die zahlreichen, nur den Gallertflechten fehlenden Flechtensäuren, deren Bildung durch das chemische Zusammenwirken von Pilz und Alge bedingt ist und deren Ablagerung an der Oberfläche der Hyphenmembranen in Form von Kristallen oder Körnchen erfolgt. Ihre Rolle als Schutzmittel gegen Tierfraß (Schnecken) scheint nach ZOPF nicht von allgemeiner Bedeutung zu sein[394].
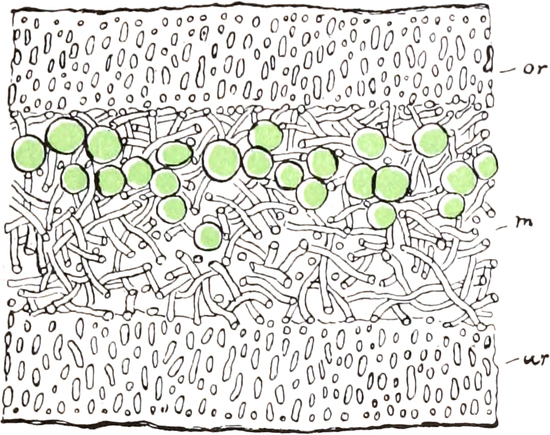
Fig. 423. Cetraria islandica. Querschnitt durch den Thallus. or Rindenschicht der Oberseite, ur der Unterseite, m Markschicht mit den grünen Algenzellen von Cystococcus humicola. Vergr. 272.
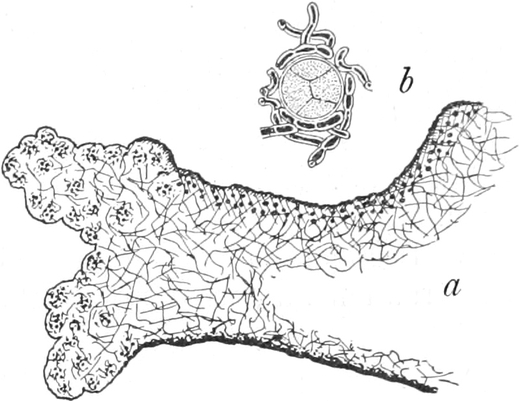
Fig. 424. Parmelia physodes. Soral (a) und Soredium (b). Nach BITTER und NIENBURG.
Die Flechten sind in großer Artenzahl über die ganze Erde verbreitet; selbst in den Polarländern und auf den höchsten Berggipfeln dringen sie viel weiter vor als die Moose. Ihre Hauptentwicklung erfahren sie in feuchten Gebirgsregionen, wo sie oft in geselliger Vegetation den Boden, die Felsblöcke und Baumstämme überziehen oder in Form langer Bärte massenhaft von den Baumästen herabhängen. In der Arktis bilden sie auf trockenem Boden ausgedehnte Flechtentundren.
Die einfachsten Flechten sind die Fadenflechten; sie bestehen aus Algenfäden, die der Länge nach von Pilzhyphen umsponnen sind. Als Beispiel sei Ephebe pubescens genannt, deren vielästige verzweigte Fäden an feuchten Felsen in Form schwärzlicher Filzlager auftreten.
Sodann unterscheidet man Gallertflechten, mit gallertigem, laubartigem Lager. Ihre Algen sind Chroococcaceen und Nostocaceen mit aufquellenden Membranen. In der Algengallerte verlaufen die Pilzhyphen. Von einheimischen Gattungen gehört z. B. Collema hierher.
Sowohl bei den Faden- als Gallertflechten sind Algen und Pilzhyphen gleichmäßig im Thallus verteilt, und dieser wird daher als ungeschichtet oder homöomer bezeichnet. Die Algen bestimmen hier in erster Linie seine Form.
Die übrigen Flechten weisen dagegen einen geschichteten oder heteromeren Thallus auf. Die Flechtenalgen, unter denen die einzellige Protococcacee Cystococcus humicola die häufigste, von fadenförmigen die zu den Ulotrichales gehörige Trentepohlia umbrina zu nennen ist, treten hier in Schichten auf, die von einer aus dicht verflochtenen Pilzhyphen bestehenden Rindenschicht bedeckt werden (Fig. 423). Man unterscheidet unter den heteromeren Flechten Krustenflechten, deren Thallus in Form von Krusten an Baumstämmen, an Felsen oder auf dem Erdboden festgewachsen ist oder mittels Pilzhyphen etwas in das Substrat eindringt; ferner Laubflechten (Fig. 428), deren Thallus laubartig, klein- oder großlappig ist und auf der Unterseite entweder nur in der Mitte oder bis auf die freien Ränder mittels rhizoïdartiger Pilzhyphen (Rhizinen) angewachsen ist; endlich Strauchflechten (Fig. 425, 427), mit verzweigtem, fadenförmigem oder bandförmigem, an der Basis angeheftetem, zuweilen auch frei auf dem Substrat liegendem Thallus.
Das Wachstum der Flechtenthalli ist im allgemeinen ein recht langsames. So beträgt der jährliche Zuwachs an den Thalluslappen gewisser Laubflechten nur wenige Millimeter; Parmelia furfuracea erreicht bei günstiger Belichtung in 10 Jahren nur einen Durchmesser von 31 × 60 mm[395].
An den natürlichen Standorten entwickeln sich die Flechtenpilze nur dann aus ihren Sporen weiter, wenn sie die ihnen zusagenden Algenzellen zur Verfügung haben. Nur für wenige Flechten ist festgestellt, daß ihr Pilz auch ohne Algen in der Natur existenzfähig ist, so für die tropische Cora pavonia (Fig. 433), deren Pilz zu den Basidiomyceten gehört und auch algenfreie Fruchtkörper erzeugen kann, die denen der Pilzgattung Thelephora gleichen. Wohl aber ist es gelungen, aus den Sporen gewisser flechtenbildender Askomyceten unter Zufuhr geeigneter Nährlösung Myzelien zur Entwicklung zu bringen.
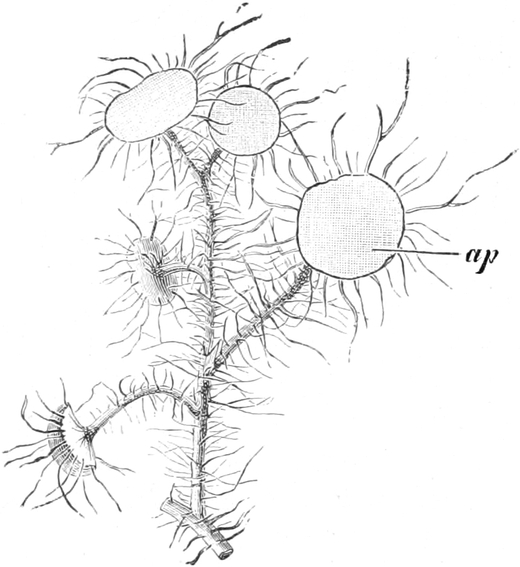
Fig. 425. Usnea florida. ap Apothecium. Nat. Gr.
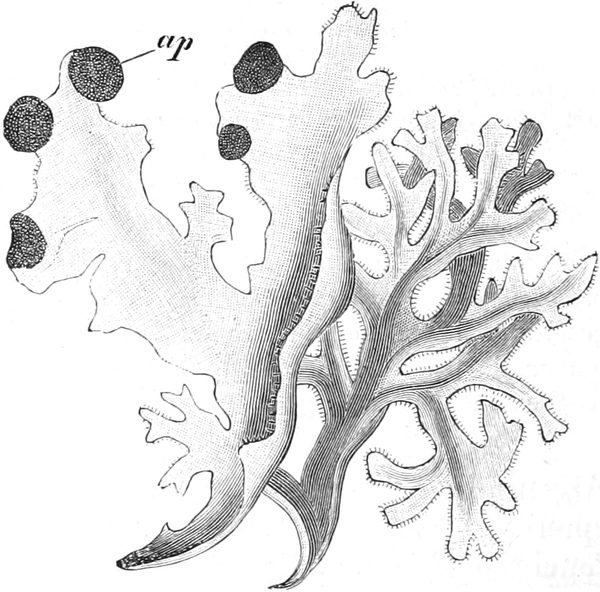
Fig. 426. Cetraria islandica. ap Apothecium. Nat. Gr. — Offizinell.
Viele Flechten vermehren sich vegetativ dadurch, daß Teile des Thallus sich lostrennen und wieder mit Rhizinen festsetzen. Die meisten heteromeren Flechten besitzen ferner in der Bildung von Soredien ein ausgezeichnetes Mittel vegetativer Vermehrung: Kleine Gruppen von sich teilenden Algenzellen werden dicht von Myzelfäden umsponnen, lösen sich los und bilden Körperchen, die unter Aufreißen von Thallusrinde als staubartige Masse frei werden, um durch den Wind verbreitet, anderswo wieder zu einer Flechte heranzuwachsen. Häufig entstehen die Soredien am Thallus in scharf umschriebenen Brutstätten, den Soralen (Fig. 424, 427).
Im Flechtenthallus fruktifizieren nur die Flechtenpilze, nicht aber die stets vegetativ bleibenden Flechtenalgen.
Nur bei einigen Gattungen (Endocarpon) finden sich besondere klein ausgebildete Algenzellen auch in den Früchten vor, werden mit den Sporen gemeinsam ausgeworfen und von den Keimschläuchen des Flechtenpilzes alsbald umsponnen.
1. Ascolichenes. Nur wenige Flechtengattungen haben krugförmige Perithecien; ihre Pilze gehören daher zu den Pyrenomyceten, so die Laubflechte Endocarpon, die Krustenflechte Verrucaria. Die meisten Gattungen aber besitzen schüssel- oder scheibenförmige Apothecien, die wie die Fruchtkörper der Diskomyceten gebaut sind. Von Strauchflechten gehört hierher als eine der häufigsten Arten die an Baumstämmen festsitzende Usnea florida, die Bartflechte, mit großen, am Rande bewimperten Apothecien (Fig. 425); die breit bandförmige, verzweigte, an Bäumen wachsende Ramalina fraxinea; ferner die an Küstenfelsen der warmen Zone verbreiteten Roccella-Arten mit gabelig verzweigtem, drehrundem oder bandförmigem Thallus (Fig. 427). Eine Mittelstellung zwischen Strauch- und Blattflechten nimmt die auf den Gebirgen und im Norden der nördlichen Hemisphäre weitverbreitete offizinelle Cetraria islandica, das isländische Moos (Fig. 426), ein, mit gegabelten, blattartigen Thalluslappen, welche braun, auf der Unterseite weißlich gefärbt sind und die Apothecien an ihren Rändern tragen. Zu den Laubflechten gehören die zahlreichen, an Bäumen und Felsen wachsenden Arten von Parmelia (Fig. 428). Eine eigenartige Krustenflechte ist die Schriftflechte, Graphis scripta, deren grauweißer Thallus auf Rinde, besonders von Buchen, lebt und deren Apothecien die Form von schwarzen schmalen, strichförmigen oder gegabelten, an Schriftzüge erinnernden Rinnen haben.
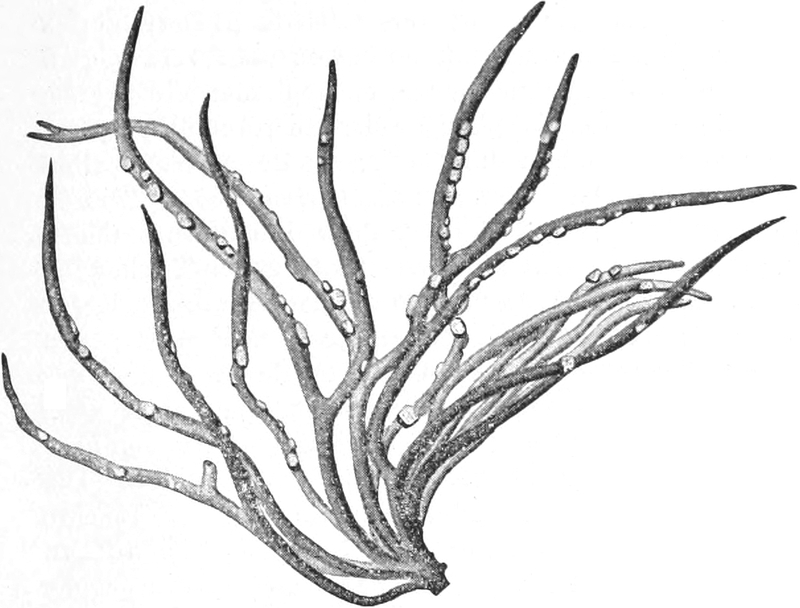
Fig. 427. Roccella tinctoria DC. Kanarische Inseln. Mit randständigen Soralen. Nach WIESNER, Rohstoffe.
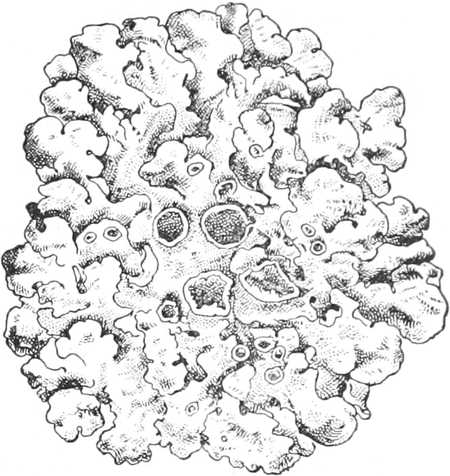
Fig. 428. Parmelia acetabulum, an Bäumen. Nach REINKE.
Eine besondere Entwicklung erfährt der Flechtenthallus bei der vielgestaltigen erdbewohnenden Gattung Cladonia. Auf einem aus horizontalen, dem Substrat aufsitzenden, gekerbten Schüppchen bestehenden primären Thallus erheben sich vertikale Gebilde (Podetien) von sehr verschiedener Gestalt und Größe. Sie sind bei manchen Arten, so bei Cladonia pyxidata, der Becherflechte, und bei Cladonia coccifera (Fig. 429) gestielt kreiselförmig und tragen am Becherrand oder seinen Aussprossungen, die bei ersterer Art braunen, bei letzterer roten rundlichen Apothecien. Bei anderen Arten sind die Podetien zylindrisch, einfach oder gegabelt; bei Cladonia rangiferina, der Renntierflechte, die über die ganze Erde verbreitet ist und rasenbildend in den nordischen Tundren auftritt, sind die Podetien (Fig. 430) zierlich verästelt; ihr Primärthallus geht frühzeitig zugrunde.
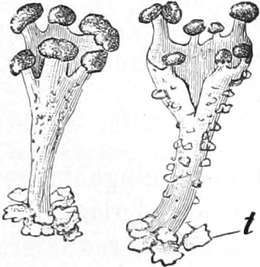
Fig. 429. Cladonia coccifera. t Thallusschüppchen. Nat. Gr.
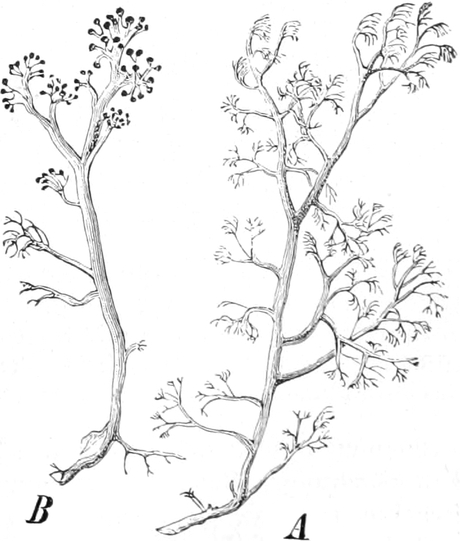
Fig. 430. Cladonia rangiferina. A Steril. B Mit Askusfrüchtchen an den Astenden. Nat. Gr.
Die Askusfrüchte, Apothecien und Perithecien, nehmen, wie zuerst Stahl und in neuerer Zeit besonders BAUR[396] nachgewiesen hat, ihren Ursprung aus befruchteten Karpogonen, weiblichen Sexualorganen, die im jungen Thallus oft in sehr großer Anzahl angelegt werden. Das Karpogon (Fig. 431) ist hier ein vielzelliger, im unteren Teile mehrfach schraubig gewundener Faden, der sich in ein langzelliges, mit seiner Spitze aus dem Thallus hervorragendes Trichogyn fortsetzt. Die Zellen enthalten je einen Kern, führen im unteren Teile des Karpogons dichteres Plasma und sind durch Tüpfel verbunden. Abgesehen von der Vielzelligkeit erinnern diese Gebilde an die Karpogone der Florideen. Als männliche Sexualzellen erscheinen die in krugförmigen Behältern, den Spermogonien (Fig. 432), erzeugten Spermatien, deren Entwicklung auf verschiedene Art erfolgt[397]. Entweder ist die Innenwand der Spermogoniumhöhlung mit einfachen oder verzweigten Hyphenästen ausgekleidet, die an ihren Enden die Spermatienzellen abgliedern (Peltigera, Parmelia), oder das Spermogonium ist anfangs von Hyphengewebe dicht erfüllt, später aber durch dessen Auseinanderweichen von Hohlräumen durchsetzt, aus deren Wandzellen die Spermatien auf sehr kleinen und dünnen Stielchen hervorsprossen (Anaptychia, Physcia, Sticta). Die Spermatien werden, in Schleimmassen eingebettet, aus ihren Behältern entleert, kopulieren mit den klebrigen Spitzen der Trichogyne (Fig. 431 B) und erscheinen dann leer, ohne Kern; darauf kollabieren die Zellen des Trichogyns, gehen später zugrunde, während die mittleren Zellen des schraubigen Karpogons anschwellen, sich auch noch weiter teilen und nun zu den askogenen Hyphen aussprossen, die an ihren Enden die Asci bilden. Die vegetativen Hyphen und die Paraphysen der Früchte entspringen aus den unter dem Karpogon befindlichen Hyphen. Entweder nur ein oder auch mehrere Karpogone zusammen liefern eine Frucht. Das Verhalten der Sexualkerne bedarf noch eingehender Untersuchung. Solche Karpogone sind bereits bei manchen Gattungen als Anlage der Früchte nachgewiesen, indessen erscheinen sie bei einigen (Peltigera, Solorina) reduziert und besitzen kein Trichogyn mehr; diese Flechten sind anscheinend apogam geworden. Spermogonien werden bei ihnen überhaupt nicht mehr gebildet, oder sind, wie bei Nephromium, deutlich in Rückbildung begriffen. Von A. MÖLLER wurde festgestellt, daß die Spermatien auch vegetativ auskeimen können; indessen kann dies nicht als Beweis gegen die ursprünglich sexuelle Natur dieser Gebilde gelten, da es sich möglicherweise um Funktionswechsel handelt.
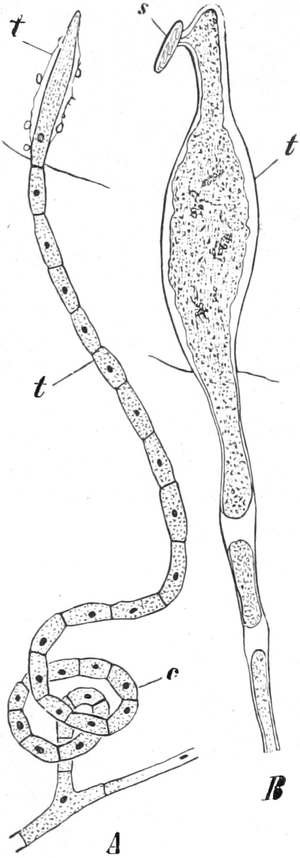
Fig. 431. Collema crispum. A Karpogon c mit Trichogyn t. Vergr. 405. B Spitze des Trichogyns mit Spermatium s. Vergr. 1125. Nach E. BAUR.
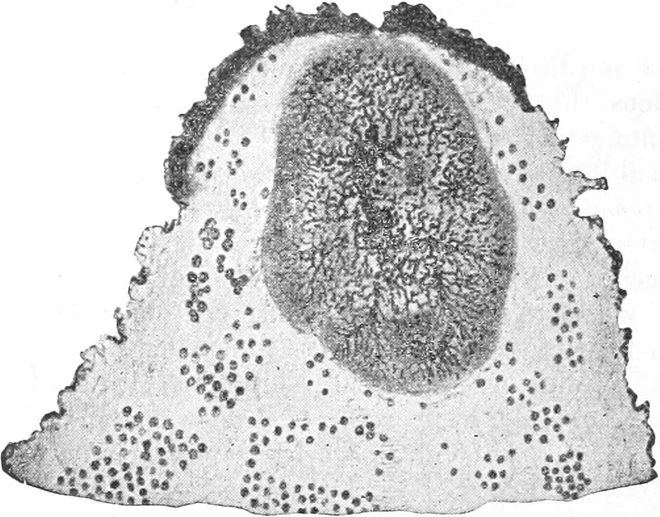
Fig. 432. Anaptychia ciliaris. Reifes Spermogonium. Vergr. 192. Die runden Zellen im Thallusgewebe stellen die grünen Algenzellen vor. Nach GLÜCK.
Sehr merkwürdig verhält sich nach F. BACHMANN Collema pulposum. Die Spermatien entstehen hier im Innern des Thallus zu wenigen gruppenweise an den Hyphen und lösen sich nicht ab; die langen Endzellen der Trichogyne bleiben im Thallus, wachsen auf sie zu und fusionieren mit ihnen[398].
2. Basidiolichenes (Hymenolichenes)[399]. Als Typus der Basidiolichenen ist die in den Tropen weitverbreitete, auf dem Erdboden oder an Bäumen lebende Cora pavonia zu nennen. Der Pilz der Cora ist eine Thelephoree (vgl. S. 405), deren halbkreisförmige, gelappte, dachziegelartig gruppierte Fruchtkörper auch ganz ohne Algen gefunden werden. Tritt der Pilz in Symbiose mit einzelligen Chroococcusalgen, so resultiert als Fruchtkörper die typische Cora pavonia (Fig. 433), die wie ein Thelephorafruchtkörper auf ihrer Unterseite ein durch Risse gefeldertes Basidienhymenium entwickelt. Tritt dagegen derselbe Pilz mit den Fäden der blaugrünen Alge Scytonema in Symbiose, so bildet sich, wenn der Pilz überwiegt, die Flechte zu strahlig fädigen, an Baumästen abstehenden Scheiben mit dem Hymenium auf der Unterseite aus (Dictyonema-Form), und wenn die Alge formbestimmend ist, in Form von feinfädigen filzigen Überzügen auf Baumrinde mit unregelmäßigen, an den vom Lichte abgewandten Stellen des Thallus erscheinenden Hymenien (Laudatea-Form).
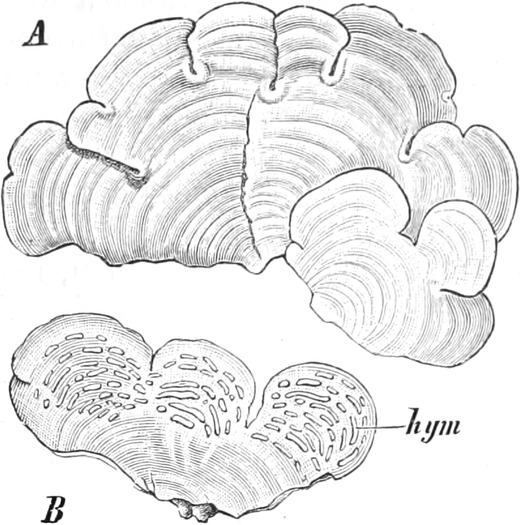
Fig. 433. Cora pavonia. A Von oben. B Von unten. hym Hymenium. Nat. Gr.
Offizinell ist Cetraria islandica, Lichen islandicus (Pharm. germ., austr., helv.), die beim Kochen die bittere Licheningallerte liefert. Als Volksmittel wird auch noch die Lungenflechte Lobaria pulmonaria (Muscus pulmonarius), die stattlichste einheimische, an Bäumen wachsende Laubflechte, gebraucht.
Die Mannaflechte, Lecanora esculenta, ist eine ursprünglich auf Gestein lebende alpine Krustenflechte des Orients. Sie zerfällt in Stücke, die zu kugeligen Knollen von 7–12 mm Durchmesser heranwachsen und vom Winde weithin in die Steppen und Wüsten Südrußlands, Kleinasiens und Nordafrikas verbreitet werden. Hier dienen sie den Eingeborenen als Nahrungsmittel, den Tartaren zur Bereitung von Erdbrot. Auch Cetraria islandica (Fig. 426) kann nach Auswässerung ihrer Bitterstoffe wegen ihres reichen Gehalts an Kohlehydraten (Flechtenstärke) als Nahrungsmittel zu Brot und zu Gallerte verwendet werden. Cladonia rangiferina (Fig. 430) bildet die wichtigste Nahrung der Renntiere, kann auch nach Entbitterung als Futter für Vieh und Geflügel benutzt werden und dient in Norwegen zur Gewinnung von Alkohol. In Japan wird eine an Stärke und Gallerte reiche felsbewohnende Laubflechte, Gyrophora esculenta, mit kreisrundem, 3–13 cm großem, in der Mitte dem Substrat angewachsenem bräunlichen Thallus, als wohlschmeckendes Nahrungsmittel viel benutzt.
Einige an Flechtensäuren besonders reiche Arten werden zur Darstellung der Farbstoffe Orseille, Persio, französischer Purpur und Lackmus verwertet, in erster Linie Roccella-Arten (besonders R. Montagnei, R. tinctoria (Fig. 427), R. fuciformis und R. phycopsis, die an Küstenfelsen wärmerer Länder wachsen, ferner die Krustenflechte Ochrolechia tartarea im nördlichen Europa und Amerika.
Die Moospflanzen umfassen die Lebermoose (Hepaticae) und die Laubmoose (Musci). Sie sind in ihrer äußeren Gliederung zwar noch Thallophyten, unterscheiden sich aber von diesen durch den eigenartigen Bau ihrer Geschlechtsorgane, der Antheridien und Archegonien, die in ähnlicher Ausbildung auch bei den Pteridophyten wiederkehren. Bryophyten und Pteridophyten werden daher den Thallophyten gegenüber auch als Archegoniaten bezeichnet.
Außer der sexuellen Fortpflanzung findet allgemein bei den Moosen wie auch bei den Pteridophyten eine ungeschlechtliche durch einzellige, mit Membran umkleidete, an die Verbreitung in der Luft angepaßte Sporen statt. Beide Fortpflanzungsweisen wechseln stets miteinander ab und sind auf zwei scharf geschiedene Generationen verteilt, eine geschlechtliche (Gametophyt), welche die Sexualorgane erzeugt, und eine ungeschlechtliche (Sporophyt), welche die Sporen hervorbringt. Die geschlechtliche Generation geht aus der Spore hervor, die ungeschlechtliche aus der befruchteten Eizelle. Die Zahl der Chromosomen der Zellkerne ist im Sporophyt doppelt so groß als im Gametophyt. Bei der Vereinigung der Sexualkerne wird die doppelte Chromosomenzahl gewonnen, bei der Teilung der Sporenmutterzellen dagegen die Reduktion auf die Hälfte vollzogen. Dieser regelmäßige Generationswechsel ist charakteristisch für alle Archegoniaten. Bei den Bryophyten stellt die Moospflanze den haploiden Gametophyten, die gestielte Sporenkapsel den diploiden Sporophyten dar; bei den Pteridophyten ist der Gametophyt eine kleine Thalluspflanze, der Sporophyt hingegen ein stattlicher Kormophyt.
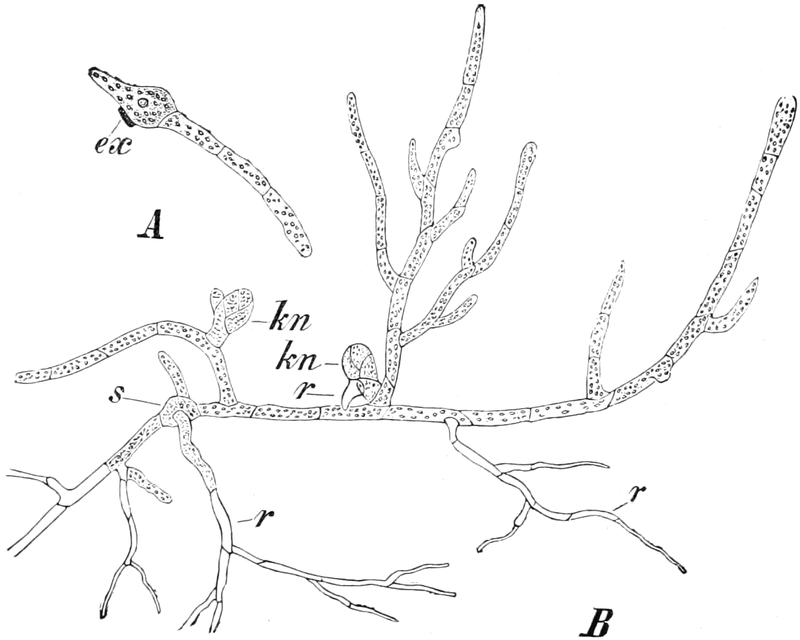
Fig. 434. Funaria hygrometrica. A Keimende Spore, ex Exine. B Protonema mit Knospen kn und Rhizoïden r, s Spore. Vergrößert. Nach MÜLLER-THURGAU.
Die die geschlechtliche Generation liefernde Spore, deren Wand aus zwei Häuten, einer äußeren kutinisierten Exine und einer inneren zarten Intine besteht, keimt unter Sprengung ihrer Exine zu einem Schlauche aus, der bei den Lebermoosen alsbald an seinem vorderen Ende zur Ausbildung der Moospflanze schreitet, während er bei den meisten Laubmoosen zunächst ein aus verzweigten Zellfäden bestehendes Protonema erzeugt. Dieses gliedert sich in chlorophyllführende aufwärts wachsende Fäden und in farblose, in den Boden eindringende Rhizoïden (Fig. 434). An dem Protonema entstehen aus seitlichen Knospen die beblätterten Moospflanzen. Protonema und Moospflanze stellen aber, auch wo sie in solcher Weise voneinander abgesetzt sind, nur die eine, geschlechtliche Generation der Pflanze vor. Alle Moose wachsen mittels Scheitelzellen heran (S. 70). Viele Lebermoose weisen noch einen aus dichotomisch verzweigten Lappen bestehenden Thallus (Fig. 448 u. 449) auf, der an seiner Basis oder an seiner Unterseite mittels Rhizoïden festgeheftet ist; sie wiederholen somit den vegetativen Aufbau mancher Algen. Bei höheren Lebermoosen und bei allen Laubmoosen ist dagegen eine scharfe Gliederung der Pflanze in Stämmchen und kleine Blättchen durchgeführt (Fig. 451 u. 458). An den unteren Teilen der Stämmchen entspringen Rhizoïden; echte Wurzeln fehlen den Moosen, die sich somit in ihrer äußeren Gestaltung nicht über die Stufe eines reichgegliederten Thallus erheben, wie wir ihn beispielsweise bei Sargassum unter den Braunalgen antreffen. Die Moosstämmchen und Blätter sind von einfacher anatomischer Struktur; sie werden, wenn überhaupt, nur von sehr einfachen, aus gestreckten Zellen gebildeten Leitbündeln durchzogen. Die Sexualorgane, Antheridien und Archegonien entspringen, in der Regel zu mehreren, bei thallösen Formen dem Rücken des Thallus, bei den in Stengel und Blätter gegliederten Formen auf dem Scheitel des Stämmchens oder seiner Äste.
Die Antheridien[401] (Fig. 435) oder männlichen Organe sind auf einem mehrzelligen Stiele sitzende, kugelige oder keulenförmige Gebilde, deren dünne, meist einschichtige Wandung zahlreiche kleine kubische Zellen umschließt, von denen eine jede sich schließlich in zwei Spermienzellen diagonal oder quer teilt[402]. Das Öffnen des Antheridiums vollzieht sich bei den Laubmoosen an seiner Spitze in einer aus einer oder mehreren Zellen bestehenden besonderen Öffnungskappe, deren schleimhaltiger Inhalt aufquillt und so die Kutikula aufsprengt (Fig. 440 A); bei den Lebermoosen ist die Kappe nicht scharf abgegrenzt, die schleimhaltigen aufquellenden Wandzellen reißen im oberen Teile des Antheridiums unregelmäßig auseinander. Nun werden die Spermienzellen entleert, aus denen durch Verquellung ihrer Wandung die Spermien als kurze, etwas gewundene Fäden frei werden, die nahe am Vorderende zwei lange feine Zilien tragen (Fig. 435).
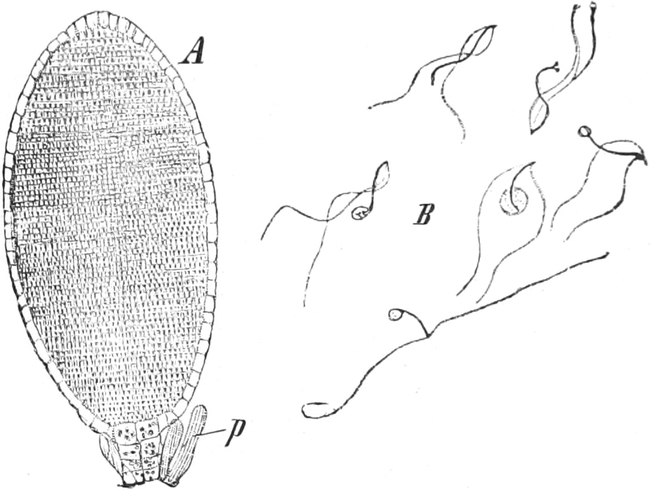
Fig. 435. Marchantia polymorpha. A Ein fast reifes Antheridium im Durchschnitt, p Paraphysen. Vergr. 90. B Spermien. Vergr. 600. Nach STRASBURGER.
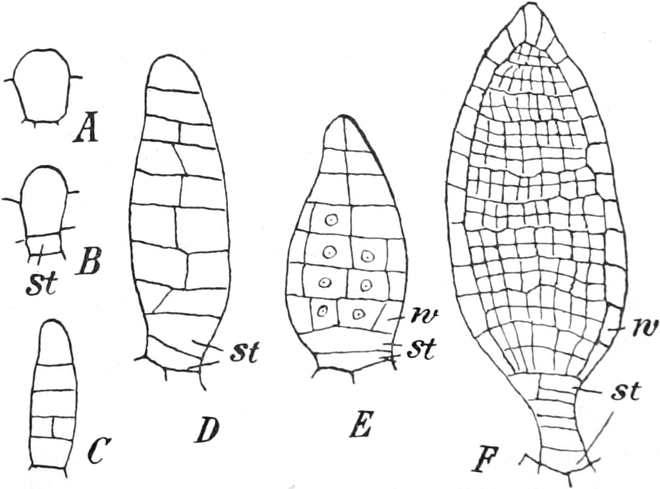
Fig. 436. Antheridiumentwicklung von Fegatella conica, einem Marchantiaceen-Lebermoos. A Einzellige Anlage. B Die Stielzelle st abgetrennt. C, D Querscheibenzellen abgeteilt, die sich durch senkrechte Wände fächern. E Anlage der Wandschicht w. F Halbreifes Stadium. A–E Vergr. 400. F Vergr. 220. Nach BOLLETER.
Die Entwicklung des Antheridiums erfolgt durch Teilung einer Oberflächenzelle; nur bei Anthoceros (Fig. 445) wird es endogen angelegt. Bei den übrigen tiefer stehenden Lebermoosen (Marchantiales) teilt sich diese Zelle in scheibenförmige Quersegmente, die durch senkrechte Wände in je vier Zellen zerlegt werden, worauf in diesen Quadranten durch tangentiale Wände die peripherischen Wandzellen sich von den inneren, das spermatogene Gewebe liefernden Zellen abteilen (Fig. 436 A–F). Bei den höheren Lebermoosen (Jungermanniales) wird die Ausgangszelle in drei Quersegmente zerlegt, von denen nur das oberste den Antheridienkörper liefert, indem es sich zunächst senkrecht in zwei Zellen teilt: dann wird in diesen durch je zwei schiefe aufeinanderfolgende Längswände die Anlage der Wandung und die des spermatogenen Gewebes geschieden. Bei den Laubmoosen (Musci) hingegen baut sich das Antheridium auf aus Segmenten einer zweischneidigen Scheitelzelle, die aus der obersten Querscheibe durch zwei schräge Wände herausgeschnitten wird. Die einzelnen Segmente werden dann in peripherische Wandzellen und je eine, spermatogenes Gewebe liefernde Innenzelle zerlegt (Fig. 437 A–F).
Die Archegonien (Fig. 438)[401] stellen kurzgestielte, flaschenförmige Organe vor, deren Wandung einen Bauchteil und einen Hals unterscheiden läßt. Der Bauchteil umschließt eine große Zentralzelle, deren Inhalt kurz vor der Reife in die Eizelle und in eine am Grunde des Halses gelegene Bauchkanalzelle zerfällt. An diese schließt im Halse eine zentrale Reihe von Halskanalzellen an, deren Zahl bei den Lebermoosen geringer (4 oder 8), bei den Laubmoosen größer (etwa 10–30 oder noch höher) ist. Die Öffnung des Halses geschieht dadurch, daß seine obersten schleimhaltigen Zellen aufquellen, die Kutikula zerreißen und sich, oft in Form von vier Lappen, zurückrollen (Fig. 440 B)[403]. Die Kanalzellen verquellen alsdann zu Schleim. Da der Befruchtungsvorgang sich nur im Wasser vollziehen kann, so erfolgt er bei den Landformen nur nach Benetzung durch Regen oder Tau. Die Bewegungsrichtung der Spermien, die auf die Archegonien zusteuern und den Hals hinab zum Ei gelangen, wird bestimmt durch besondere Stoffe, die aus dem weiblichen Organ herausdiffundieren.
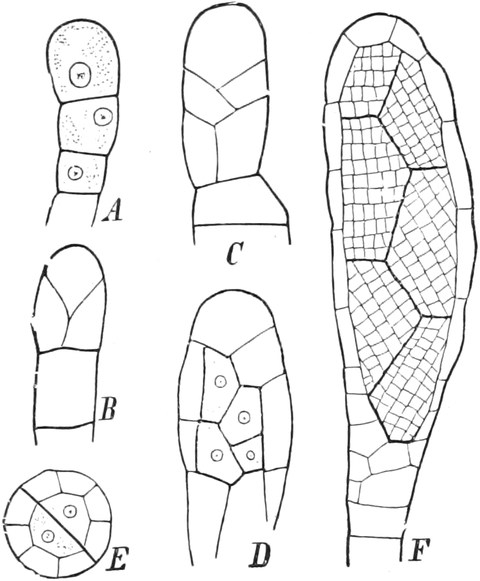
Fig. 437. Antheridiumentwicklung von Funaria hygrometrica, einem Laubmoos. A Querteilung der Anlage. B Bildung der Scheitelzelle aus der obersten Zelle. C Teilungen der Scheitelzelle. D Scheidung in Wandung und Anlage des spermatogenen Gewebes. E Desgleichen im Querschnitt. F Älteres Stadium. Nach D. CAMPBELL.
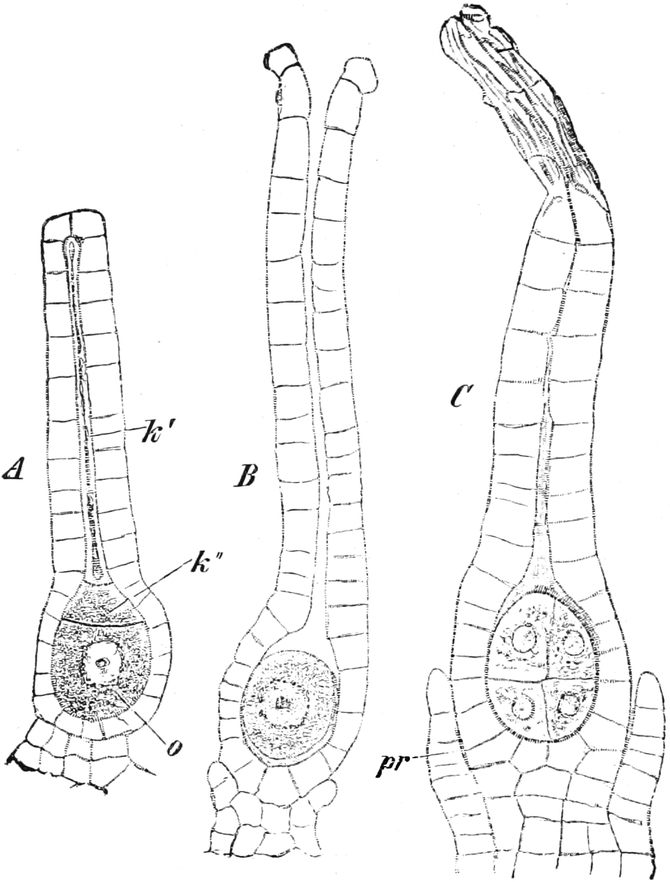
Fig. 438. Marchantia polymorpha. A Junges, B geöffnetes, C befruchtetes Archegonium mit achtzelligem Keimling, k′ Halskanalzellen, k″ Bauchkanalzellen, o Ei, pr Pseudoperianth. Vergr. 540. Nach STRASBURGER.
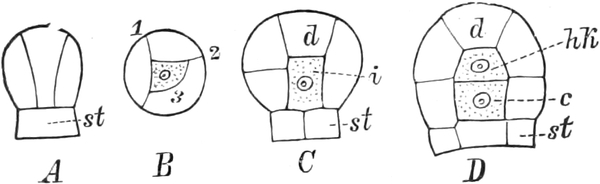
Fig. 439. Entwicklung des Lebermoosarchegoniums. A (Längsschnitt) und B (Querschnitt) Teilung der oberen Zelle durch drei Wände. C Die mittlere Zelle in Deckelzelle d und Innenzelle i geschieden. D Die Innenzelle geteilt in Anlage der Halskanalzellen hk und Zentralzelle c, die die Eizelle und Bauchkanalzelle liefert. st Stielanlage. Nach GOEBEL.
Die Samenfäden der Laubmoose werden von Rohrzuckerlösung angelockt, diejenigen des Lebermooses Marchantia von Proteïnstoffen, außerdem bei Versuchen auch von Kalium-, Rubidium- und Cäsiumsalzen[404].
Die Entwicklung des Archegoniums vollzieht sich aus einer Oberflächenzelle. Bei den Lebermoosen teilt sie sich in eine den Stiel liefernde untere Zelle und in eine obere Zelle, die durch drei Längswände in drei äußere und eine mittlere zerlegt wird, diese wiederum durch eine Querwand in eine Deckelzelle und eine Innenzelle. Aus den äußeren Zellen geht die Wandung des Hals- und Bauchteiles hervor, aus der Innenzelle die Halskanalzellen, Bauchkanalzelle und Eizelle (Fig. 439). Bei den Laubmoosen dagegen wird in der Ausgangszelle durch zwei schiefe Wände eine zweischneidige Scheitelzelle abgeteilt, deren Segmente den Stiel aufbauen. Dann wird die endständige zweischneidige Zelle durch drei schräge Wände und eine Querwand in eine dreischneidige, unten abgestutzte Scheitelzelle, eine unter dieser liegende Zentralzelle und drei peripherische Wandzellen zerlegt. Die Zentralzelle liefert die Eizelle, Bauchkanalzelle und Halskanalzellen, die Scheitelzelle dagegen aus ihren Segmenten die Wandung des Halsteils und durch Querteilung auch noch die obersten Halskanalzellen. Die Sphagnaceen nehmen nach MELIN eine Mittelstellung ein, insofern der Stiel wie bei den Laubmoosen, der Archegoniumkörper aber ähnlich wie bei den Lebermoosen ohne dreiseitige Scheitelzelle gebildet wird.
Antheridien und Archegonien sind, wie aus gelegentlich auftretenden intermediären Gebilden hervorgeht, homologe Organe; Bauchkanal- und Halskanalzellen würden demnach funktionslos gewordene Gametenzellen vorstellen. Die Bauchkanalzelle ist in der Regel kleiner als die Eizelle, kann aber zuweilen gleichwertig mit der Eizelle ausgebildet werden. Auch können sich gelegentlich mehrere Eizellen in einem Archegoniumbauch entwickeln, so bei Sphagneen vier oder noch mehr.
Nach der Befruchtung teilt sich die Zygote und entwickelt sich im Archegonium weiter zum Embryo, ohne erst einen Dauerzustand durchzumachen (Fig. 438 C). Der Embryo wächst heran zum Sporogon, das die ungeschlechtliche Generation vorstellt, die aber zeitlebens mit der anderen Generation verbunden bleibt und wie eine halbparasitische Pflanze von dieser zum Teil die zu ihrer Entwicklung nötigen Substanzen bezieht. Das Sporogon ist ein kürzer oder länger gestielter, rundlicher oder ovaler Sporenbehälter, in welchem zahlreiche Sporen erzeugt werden. Allgemein entstehen die Sporen der Moose, wie auch die der Farnpflanzen und Samenpflanzen zu vier, in Tetraden, durch zweimalige, mit Reduktion der Chromosomenzahl verbundene Teilung der Sporenmutterzellen, die sich vorher voneinander loslösen und abrunden.
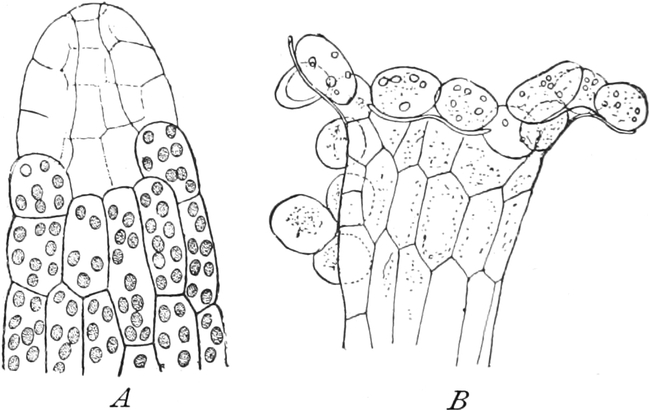
Fig. 440. A Spitze des entleerten Antheridiums von Polytrichum mit Resten der Öffnungskappe, halbiert gezeichnet. Nach GOEBEL. B Geöffneter Hals des Archegoniums von Mnium undulatum. Nach ZIELINSKI.
Bei den Laubmoosen dringt der untere, als Saugorgan dienende Teil des Embryos in das sich oft stark vergrößernde Gewebe des Archegoniumstieles, in manchen Fällen sogar bis in das Gewebe des Stämmchens ein. Dieses Gewebe und der mitwachsende Archegoniumbauch bilden dann zusammen die Hülle, die schließlich von dem sich streckenden Embryo durchbrochen wird. Der oberste, aus dem Archegoniumbauch hervorgegangene Teil der Hülle wird dabei als Calyptra oder Haube emporgehoben, während der untere als Scheide den Sporogonstiel an seiner Basis umgibt. In ähnlicher Weise wird auch die Hülle bei einem Teil der Lebermoose (so in der Regel bei den Marchantiales) gebildet; bei den übrigen aber wächst der Embryo mit seiner Basis in das unter dem Archegonium befindliche Thallus- oder Stämmchengewebe mehr oder weniger tief hinein; auch kann in bestimmten Fällen das dem Archegonium benachbarte Gewebe zu einem beutelartigen, meist in den Boden eindringenden Gebilde, dem Marsupium, heranwachsen, in welches das Archegonium mit seinem Embryo hineinversenkt erscheint. So kommt es schließlich für diesen zur Bildung eines eigenartigen Schutz- und Ernährungsorganes.
Die Entwicklung der Sporogone[405] zeigt bemerkenswerte Verschiedenheiten. Bei den niederen Lebermoosen (Marchantiales) teilt sich die Zygote quer und längs in 8, dann radial weiter in 16 Zellen und diese durch perikline Wände in äußere und innere Zellen (Fig. 441). Aus der unteren Hälfte des Embryos geht der Fuß und der kurze Stiel hervor, aus der oberen die Kapsel, deren zentrale Zellen, das Archespor, das vielzellige sporogene Gewebe liefern. Diese Zellen werden zum Teil zu Sporenmutterzellen; zum Teil bleiben sie steril und dienen zunächst als Nährzellen für die ersteren (Fig. 441 C). Dann wachsen die Nährzellen meist zu faserförmigen Gebilden mit schraubenbandförmigen Wandverdickungsleisten heran, zu Schleudern (Elateren), die nach der Öffnung ihrer Kapsel durch ihre hygroskopischen Bewegungen die Sporen auflockern und ausstreuen. Nur bei den Ricciaceen werden sämtliche Zellen des inneren Gewebes zu Sporenmutterzellen, und das ganze Sporogon ist hier zu einer rundlichen ungestielten Kapsel mit einschichtiger Wand vereinfacht.
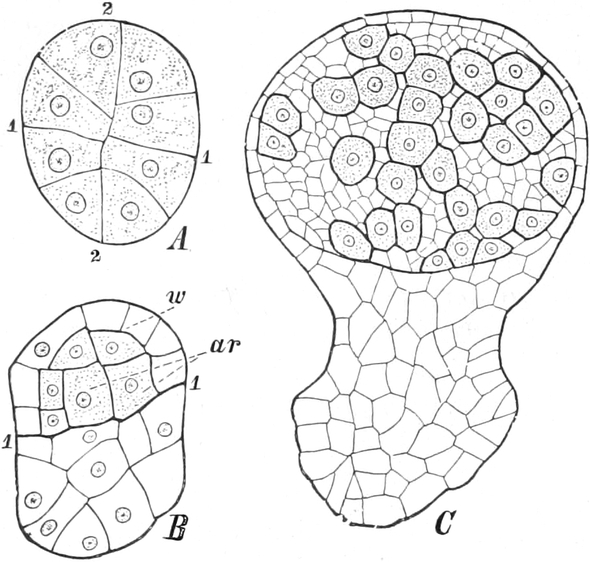
Fig. 441. Sporogonentwicklung von Corsinia marchantioides, einem Marchantiaceen-Lebermoos. A Die Zygote in 16 Zellen geteilt. B Die untere Hälfte des Embryos entwickelt sich zum Fuß, die obere zur Kapsel, w Wandzellen, ar Archespor. Vergr. 170. C Älteres Sporogon. In der Kapsel die aus dem Archespor hervorgegangenen Sporenmutterzellen und kleineren sterilen Zellen. Letztere erfahren bei Corsinia keine Weiterentwicklung zu Elateren. Vergr. 90. Nach K. MEYER.
Bei den höheren Lebermoosen (Jungermanniales) teilt sich die Zygote erst einigemale quer, die unterste Zelle wird meist zu einem ein-, selten mehrzelligen Saugorgan, die oberen Zellen liefern Fuß, Stiel und Kapsel. Aus dem sporogenen Gewebekomplex gehen auch hier neben den Sporenmutterzellen sterile Zellen hervor, die bei den meisten Gattungen wiederum zu Elateren sich weiterentwickeln.
Die Lebermoosgruppe der Anthocerotales weicht im Bau des Sporogons bedeutend von den vorher genannten ab und nähert sich in einigen Eigentümlichkeiten den Laubmoosen (vgl. S. 423).
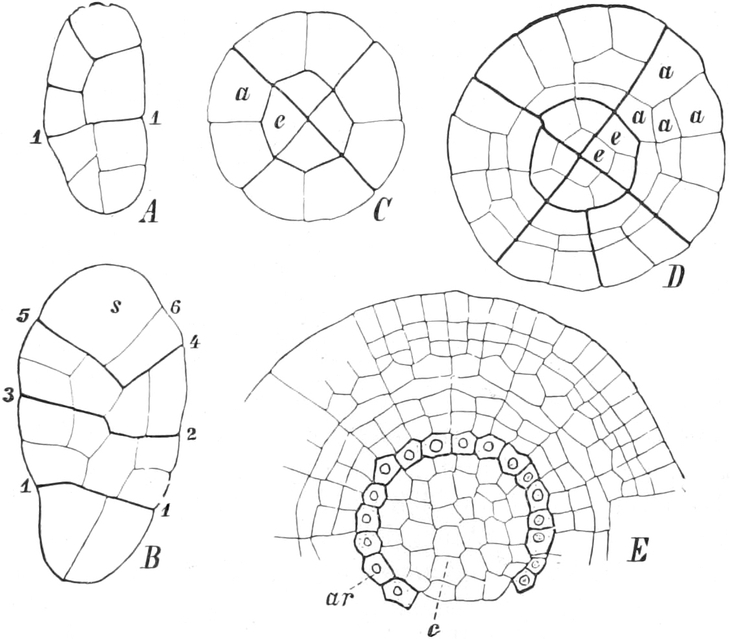
Fig. 442. Sporogonentwicklung von Funaria hygrometrica, einem Laubmoos. A, B Längsschnitt. Erste Teilungen der Zygote, s Scheitelzelle. C–E Querschnitt. C Teilung in Endothecium e und Amphithecium a. D Weitere Teilungen. E Älteres Sporogon, im Endothecium die äußerste Zellschicht, das Archespor ar, abgeteilt von der Columella c. Nach CAMPBELL.
Bei den Laubmoosen besitzt das Sporogon einen axilen, der Stoffleitung dienenden Strang sterilen Gewebes, eine Columella, in deren Umkreis das Archespor in Form einer meist einfachen Zellschicht angelegt wird. Bei den Sphagnales (Fig. 454 C) und den Andreaeales überwölbt die Archesporschicht kuppelförmig die Columella, bei den Bryales (Fig. 460) dagegen hat sie die Form eines Zylindermantels. Der langgestreckte Embryo baut sich aus Quersegmenten auf, die bei den Sphagnales durch Querteilung der Zygote entstehen; bei den übrigen Laubmoosen aber, deren Zygote zuerst auch quergeteilt wird, treten in der oberen Zelle schiefe Wände auf und die von ihnen gebildete zweischneidige Scheitelzelle scheidet nach beiden Seiten hin Quersegmente ab, die sich dann weiter teilen. In den Quersegmenten, die die Mooskapsel liefern, findet zunächst eine Längsteilung statt, dann in den so entstandenen Quadranten durch perikline Wände die Zerlegung in äußere Zellen (Amphithecium) und innere Zellen (Endothecium) (Fig. 442). Das Archespor entsteht nur bei den Sphagnales als innerste Zellschicht des Amphitheciums, bei allen übrigen Laubmoosen dagegen als äußerste Zellschicht aus dem Endothecium. Es liefert ausschließlich Sporen, aber keine sterilen Zellen (Fig. 443).
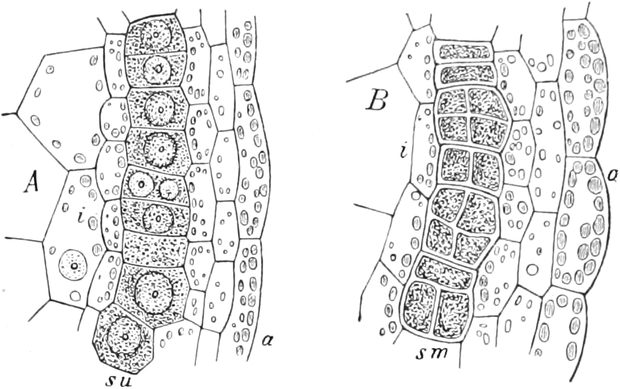
Fig. 443. Funaria hygrometrica. Querschnitt durch das Archespor (A su) und die aus ihm hervorgegangenen, noch nicht isolierten Sporenmutterzellen (B sm). Nach GOEBEL.
Die Moose sind bis auf wenige, sekundär zum Leben im Wasser übergegangene Formen Landpflanzen im Gegensatz zu den Algen und zeigen dementsprechende Anpassungen in ihrer anatomischen Struktur. So sind alle ihre oberirdischen Teile von einer Kutikula überzogen. Die bemerkenswerte Kleinheit der Moose im Vergleich zu den Farnpflanzen steht in Zusammenhang mit ihrem einfachen zelligen Aufbau, mit dem Mangel echter Gefäße und echter Wurzeln. Manche Arten sind winzige Pflänzchen, die größten Laubmoose sind die neuseeländischen Dawsonien, deren einfache beblätterte Stämmchen bis 50 cm Höhe erreichen.
Viele Moose besitzen rötliche, bräunliche, einige sogar fast schwarze Färbung, die in den meisten Fällen durch besondere Membranfarbstoffe (Anthocyane und Phlobaphene), seltener durch gefärbten Zellsaft bedingt ist[406].
Die Moose weisen eine ungemeine Regenerationsfähigkeit aus abgeschnittenen Stücken aller ihrer Organe auf; ferner ist bei ihnen vegetative Vermehrung durch Brutkörper und Brutknospen sehr verbreitet, die am Thallus, an den Stämmchen, an den Blättern, am Protonema in verschiedener Art entstehen und sich loslösen[407].
Die phylogenetische Ableitung der Bryophyten von einer bestimmten Algengruppe begegnet Schwierigkeiten. Zwischen den Moosen einerseits, den höherstehenden Grünalgen und den Characeen andererseits sind keine einen Übergang vermittelnde Formen bekannt. Der morphologische Vergleich ergibt vielmehr eher eine Anknüpfung der Moose an Braunalgen, deren vielfächerige, bei einigen Gattungen bereits in Antheridien und Oogonien differenzierte Gametangien als homologe Vorläufer der Antheridien und Archegonien der Archegoniaten gelten dürfen. So zeigt das Antheridium der niederen Lebermoose noch ganz übereinstimmenden Zellenaufbau mit Braunalgengametangien (vgl. Fig. 436, 355, 357); es unterscheidet sich von ihnen durch den Besitz einer sterilen, schützenden Wandschicht, deren Differenzierung als eine Anpassung an terrestrische Lebensweise angesehen werden kann. Ferner zeigt sich unter den Braunalgen, z. B. bei Dictyota, ein mit dem der Moose übereinstimmender Generationswechsel. Gametophyt und Sporophyt haben allerdings dort in ihrem vegetativen Bau gleiche Form. Den Tetrasporangien des Dictyotasporophyten entsprechen die Sporenmutterzellen des Moossporophyten, deren endogene Anlage in zusammenhängenden Schichten auf den Einfluß terrestrischer Lebensweise sich zurückführen ließe. Der Sporophyt der Moose geht frühzeitig zur Entwicklung seiner Sporen über, beschließt damit sein Wachstum, ohne erst eine Gliederung in vegetative Organe zu erfahren, und wird so wesentlich verschieden von dem Gametophyten, dessen Gestaltung bei den thallösen Lebermoosen mit dem Thallus gewisser Braunalgen manche Analogien aufweist[408].
Die beiden scharf geschiedenen Klassen der Bryophyten charakterisieren sich kurz folgendermaßen:
1. Hepaticae, Lebermoose. Geschlechtliche Generation mit schwach entwickeltem und meist nicht scharf abgesetztem Protonema, ihr Thallus entweder flächenförmig und gabelteilig oder in Stämmchen mit dorsiventral angeordneten Blättchen gegliedert. Der Sporenbehälter erzeugt bei den meisten außer Sporen auch Elateren. Nur bei einer Ordnung, den Anthocerotales, wird in der Kapsel eine Columella ausgebildet.
2. Musci, Laubmoose. Vorkeim der geschlechtlichen Generation meist kräftig entwickelt, scharf abgesetzt, Thallus stets in Stämmchen und Blättchen gegliedert. Die Blätter in spiraliger, mehrzeiliger, seltener in zweizeiliger Anordnung, Stämmchen also poly- oder seltener bisymmetrisch beblättert. Sporenbehälter stets ohne Elateren, aber mit Columella.
Fossile Moose. Die Lebermoose sind primitiver organisiert als die Laubmoose, scheinen auch älter zu sein, da ihre fossilen Reste vereinzelt bis zum Karbon hinab, mit einiger Sicherheit aber erst im Mesozoikum gefunden werden, während die ersten Laubmoose aus der oberen Kreide bekannt wurden. Die meisten fossilen Moosreste entstammen dem Tertiär und zeigen größte Ähnlichkeit mit heutigen Gattungen.
Die Mehrzahl der Lebermoose bewohnt feuchte Standorte und besitzt dementsprechend hygrophile Struktur. Echte Wasserpflanzen sind unter ihnen nur spärlich vertreten. Manche zarte Jungermanniaceen leben versteckt in Laubmoosfilzen. Weniger zahlreich sind Formen, die extrem trockene Standorte auf Baumrinden und Felsen oder auf dem Boden bewohnen und xerophilen Bau sowie Einrichtungen zum Wasserspeichern besitzen. Unter den epiphytischen Arten sind die kleinen, epiphyllen, d. h. auf Blättern lebenden Lebermoose feuchter Tropenwälder bemerkenswert. Im allgemeinen spielen die Lebermoose keine bedeutende Rolle in der Zusammensetzung kryptogamer Pflanzenformationen.
Die Rhizoïden vieler Lebermoose, namentlich der Jungermanniaceen, sowie auch die chlorophyllfreien Thallusgewebe bei Marchantiaceen werden häufig von endophytischen Pilzfäden (u. a. des Mucor rhizophilus) besiedelt, die den Moosen keinen besonderen Nutzen, aber auch keinen bedeutenden Schaden bringen[410].
Die Lebermoose zerfallen nach dem Bau der Sporogone und der Gliederung der geschlechtlichen Generation in drei Ordnungen, von denen die Anthocerotales und Marchantiales ausschließlich Thalluspflanzen, die Jungermanniales teils ebensolche, teils aber Formen mit dorsiventral beblättertem, seltener, und zwar nur in der Gruppe der Haplomitrieen, mit radiär gebautem, beblättertem Stämmchen umfassen.
1. Ordnung. Die Anthocerotales[411], eine isoliert stehende Gruppe, die nur wenige Formen umfaßt, können als eine primitive Moosordnung gelten. Ihr Sporogon zeichnet sich durch einen reicheren inneren Bau aus, als das der übrigen Lebermoose, bei denen es eine fortschreitende Vereinfachung erfahren hat.
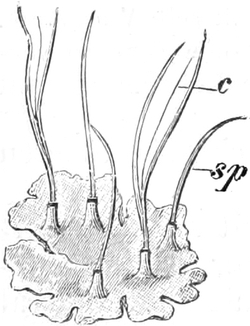
Fig. 444. Anthoceros laevis. sp Sporogon, c Columella. Nat. Gr.
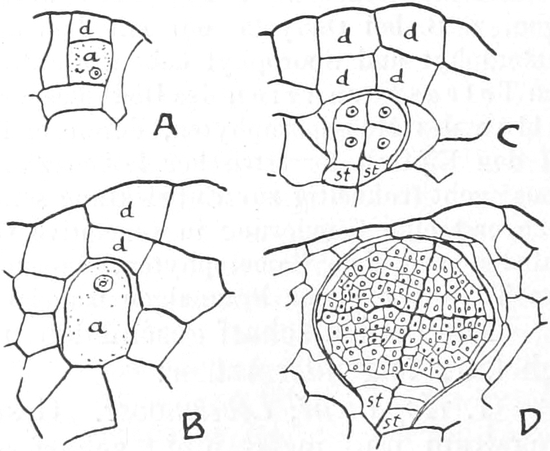
Fig. 445. Anthoceros Pearsoni. Entwicklung des endogenen Antheridiums. d Deckzellen, st Stielzellen, a Anlage des Antheridiums. Nach D. CAMPBELL.
Der Gametophyt hat die Gestalt eines gelappten, am Boden mittels Rhizoïden festgewachsenen Thallus. Seine Zellen enthalten zum Unterschied von allen anderen Moosen nur einen einzigen großen pyrenoidführenden Chlorophyllkörper. Auf der Unterseite, seltener auf der Oberseite finden sich Spaltöffnungen. Die Antheridien stehen einzeln oder zu vier im Innern geschlossener Höhlungen unter der Oberseite des Thallus (Fig. 445). Die Höhlung wird erst bei der Reife der Antheridien vermittels Schleimbildung in den Deckzellen geöffnet. Die Anlage der männlichen Organe ist also hier abweichend von allen übrigen Archegoniaten sekundär zu einer endogenen geworden, indem eine Oberflächenzelle sich zunächst in eine die Decke liefernde äußere (d) und eine innere (a), die Mutterzelle der Antheridien, teilt. Die Archegonien sind in die Oberseite des Thallus eingesenkt und werden nach der Befruchtung von einer durch Wucherung des Thallusgewebes entstehenden, mehrschichtigen Hülle (Marsupium) überwölbt, die später von der Kapselfrucht durchbrochen wird und eine Scheide an deren Basis bildet. Die befruchtete Eizelle teilt sich im Gegensatz zu den übrigen Moosen zunächst durch eine Längswand in zwei Zellen, diese dann weiter durch Querwände. Das aus dem Embryo hervorgehende Sporogon besitzt einen angeschwollenen, mit rhizoïdähnlichen Schläuchen im Thallus befestigten Fuß und eine ungestielte, lang schotenförmige, mit zwei Längsklappen aufspringende Kapsel, in deren Längsachse eine aus wenigen Zellreihen bestehende Columella sich befindet (Fig. 444). Diese wird kappenförmig von der schmalen sporenbildenden Zellschicht bedeckt. Außer Sporen erzeugt letztere auch Schleudern; sie sind hier mehrzellig, vielgestaltig, oft gegabelt. Im Gegensatz zu allen übrigen Lebermoosen reift der Kapselteil dieses Sporogons nicht gleichzeitig heran, sondern von der Spitze ausgehend unter andauernder Fortentwicklung an seiner Basis. Auch enthält die Sporogonwand Chlorophyll und besitzt Spaltöffnungen, die sonst bei Lebermoosen nicht auftreten.
An der Unterseite des Thallus der Anthocerotaceen werden durch Auseinanderweichen benachbarter Zellen Spalten erzeugt, die in Höhlungen führen, welche Schleim enthalten. In diese dringen häufig Nostocfäden ein, um sich dort zu endophytischen Kolonien zu entwickeln[412].
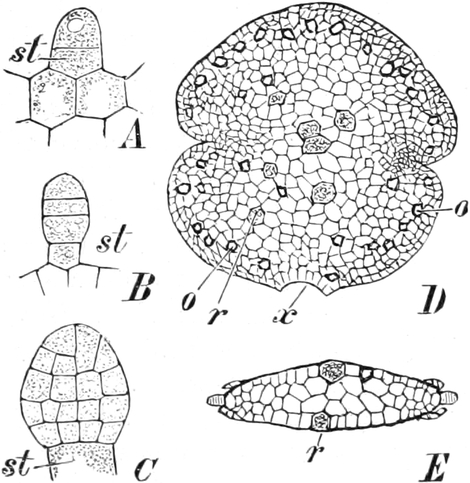
Fig. 446. Marchantia polymorpha. A–C Brutkörperentwicklung, st Stielzelle, D Brutkörper von der Fläche, E im Querschnitt, x Ablösungsstelle, o Ölzellen, r Rhizoïdanlagen. A–C Vergr. 275. D–E Vergr. 65. Nach KNY.
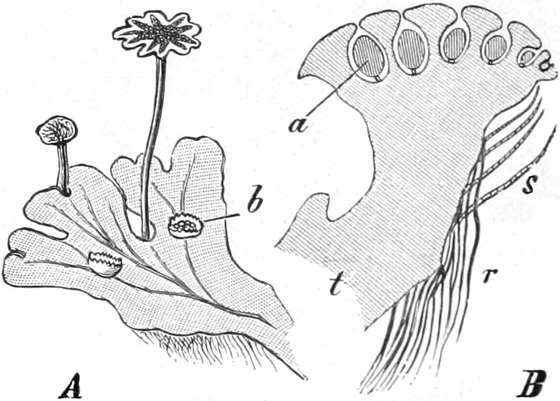
Fig. 447. A Männliche Pflanze von Marchantia polymorpha, b Brutkörbchen. Nat. Gr. B Antheridiumstand mit den eingesenkten Antheridien a, t Thallus, s Ventralschuppen. r Rhizoïden. Etwas vergr.
2. Ordnung. Die Marchantiales[413] besitzen zum Teil recht komplizierten Aufbau. Als Typus sei die an Quellen häufige Marchantia polymorpha geschildert. Sie bildet bis 2 cm breite, sich gabelig verzweigende Thalluslappen (Fig. 447 A, Fig. 448 A) mit schwachen Mittelrippen. An der Unterseite entspringen einschichtige Zellamellen oder Ventralschuppen und die Rhizoïden, die den Thallus befestigen und ihm Wasser zuführen; sie sind zum Teil glattwandig, zum Teil aber mit zapfenförmigen, nach innen vorragenden Wandverdickungen versehen (Fig. 31). Diese Zäpfchenrhizoïden verflechten sich längs der Mittelrippe zu einem Strange. Die Dorsiventralität des Thallus macht sich auch im anatomischen Aufbau geltend. Auf der Oberfläche des Thallus bemerkt man schon mit bloßem Auge eine rhombische Felderung. Jedes Feld entspricht einer unter der obersten Zellschicht befindlichen, von geschlossenen seitlichen Wänden abgegrenzten Luftkammer, die durch eine Atemöffnung in der Mitte des Feldes nach außen führt (Fig. 95 A, B). Die Öffnung besteht aus einem kurzen Kanal mit einer aus mehreren ringförmigen Stockwerken von je vier Zellen gebildeten Wandung. Vom Boden der Kammer erheben sich zahlreiche kurze, aus rundlichen Zellen bestehende Fäden, die Chlorophyllkörner enthalten und das Assimilationsgewebe vorstellen. Auch in den Kammerwänden und in der Epidermis befindet sich Chlorophyll, aber in geringerer Menge. Im übrigen besteht der Thallus aus großen chlorophyllarmen, als Speicherzellen dienenden Parenchymzellen, die an der Unterseite von einer einschichtigen geschlossenen Zellschicht bedeckt werden. Auf die Ausbildung der Luftkammern ist die Belichtung von großem Einfluß. Bei sehr schwacher Belichtung kann ihre Bildung ganz unterbleiben.
Auf den Mittelrippen der Oberseite des Thallus treten in der Regel becherförmige Auswüchse mit gezähntem Rand, die Brutbecher oder Brutkörbchen (Fig. 447 b) auf, in denen eine Anzahl von flachen Brutkörperchen sich befinden. Sie entstehen, wie Fig. 446 zeigt, durch Hervorwölbung und weitere Teilung einzelner Oberflächenzellen und sitzen mit einer Stielzelle (st) fest, von der sie sich (D bei x) ablösen. Sie haben an den beiden Einschnürungsstellen zwei Vegetationspunkte und bestehen aus mehreren Schichten von Zellen, von denen eine Anzahl mit Ölkörpern erfüllt ist (D, o), andere, farblose, als Anlagen der späteren Rhizoïden dienen. Ölhaltige Zellen treten auch im fertigen Thallus zerstreut auf und sind überhaupt bei Lebermoosen sehr verbreitet. Mit Hilfe der Brutkörperchen kann sich Marchantia in reichlichem Maße vegetativ vermehren. Die Dorsiventralität des aus dem isolateralen Brutkörper hervorgehenden Thallus wird durch den Einfluß des Lichtes bedingt.
Die Sexualorgane, Antheridien und Archegonien, werden von besonderen aufstrebenden Zweigen des Thallus getragen. Im unteren Teile sind diese Zweige stielartig zusammengerollt, im oberen Teile verzweigen sie sich sternförmig. Antheridien und Archegonien sind diözisch verteilt. Die männlichen Zweige schließen mit einer lappig gerandeten Scheibe ab, an deren Oberseite die Antheridien eingesenkt sind, und zwar ein jedes in einen flaschenförmigen Hohlraum, der mit einer engen Öffnung nach außen mündet (Fig. 447 B u. 435). Diese Höhlungen werden von Luftkammern führendem Gewebe getrennt. Die Spermien sammeln sich oben auf dem Hut in einem Wassertropfen, der durch den welligen Hutrand gehalten wird.
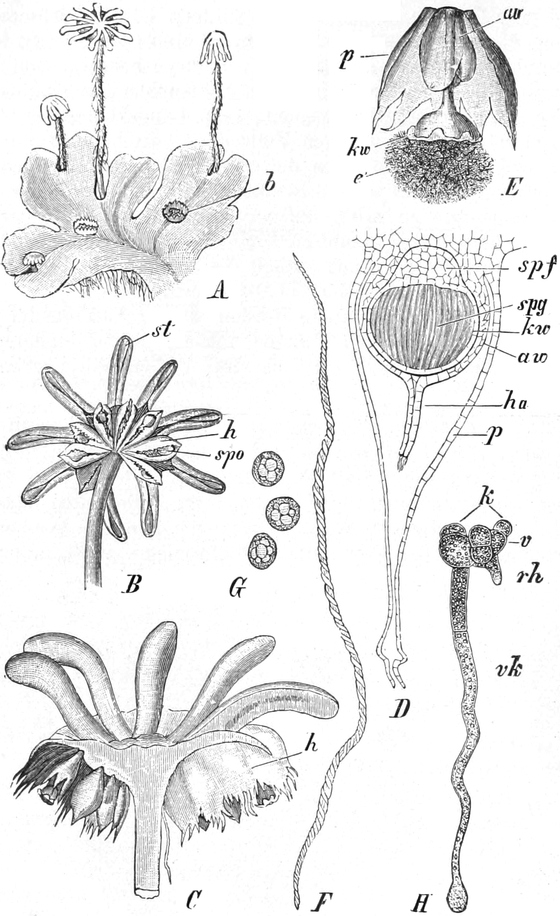
Fig. 448. Marchantia polymorpha. A Weibliche Pflanze mit vier verschiedenalterigen Archegoniumständen, b Brutkörbchen. Nat. Gr. B Archegoniumstand von unten, st Strahlen, h Hülle, spo vortretende Sporogone. Vergr. 3. C Derselbe halb durchschnitten. Vergr. 5. D Junges Sporogon im Längsschnitt, mit dem Fuß spf, dem sporenbildenden Gewebe spg, der Kapselwandung kw, der Archegoniumwandung aw, dem Archegoniumhals ha, dem Perianth p. Vergr. 70. E Aufgesprungenes Sporogon, Sporen mit Elateren e. Vergr. 10. F Ein einzelner Elater. G Reife Sporen. Vergr. 315. H Gekeimte Spore mit Keimschlauch vk und Keimscheibe k, letztere mit der Scheitelzelle v und dem Rhizoïd rh. Vergr. 100. C, E nach BISCHOFF. B, D, F–H nach KNY.
Die weiblichen Zweige (Fig. 448 A) schließen mit einem meist neunstrahligen Schirm ab. Die Oberseite des Schirmes ist zwischen den Strahlen umgeschlagen und trägt hier die Archegonien, die somit der Unterseite des Schirmes zu entspringen scheinen. Sie bilden radiale Reihen zwischen den Strahlen. Jede dieser Reihen wird von einer zierlich gezähnten Hülle (Perichaetium) (B, C, h) umgeben. Die Gestalt der Archegonien ist aus Fig. 438 ersichtlich.
Die Befruchtung erfolgt bei Regenwetter, indem Regentropfen die Samenfäden enthaltende Flüssigkeit von den männlichen Hüten auf die weiblichen Schirme spritzen, deren Epidermiszellen papillenförmig vorspringen und ein oberflächliches Kapillarsystem darstellen, in welchem die Samenfäden zu den Archegonien hinabgeleitet werden.
Nach der Befruchtung entwickelt sich die Eizelle zu einem vielzelligen Embryo (Fig. 438 C), dieser zu einem gestielten ovalen Sporogon. Seine Kapsel hat eine einschichtige Wandung, deren Zellen Ringfaserverdickungen aufweisen. Nur am Scheitel ist die Wandung zweischichtig, hier beginnt auch das Einreißen der Kapsel, indem das Deckelstück zerfällt und die Wandung in Form mehrerer Zähne sich zurückkrümmt. Die reife Kapselfrucht ist anfangs noch bedeckt von der eine Zeitlang mitwachsenden Archegoniumwandung (Fig. 448 DE, aw), die aber bei der Streckung des Stieles durchbrochen wird und an der Basis als Scheide zurückbleibt. Außerdem wird die Kapsel von einer vier- bis fünfspaltigen, dünnhäutigen Hülle, dem Perianth, umgeben, das schon vor der Befruchtung aus dem kurzen Stiel des Archegoniums ringsum als sackartige Hülle hervorzusprossen beginnt (Fig. 438 C, pr, 448 D, E, p). Die Kapsel entläßt Sporen und Elateren (Fig. 448 F, G).
Marchantia war früher als Mittel gegen Leberkrankheiten offizinell, daher auch die Bezeichnung Lebermoose.
Die Ricciaceen[414] weisen zwar eine weitgehende Vereinfachung ihrer Sporogone auf, schließen sich aber an einfacher gebaute Marchantiaceen als reduzierte Formen an. Ihr dichotomisch gelappter Thallus bildet auf Schlammboden am Ufer der Gewässer oder auf feuchten Äckern kleine Rosetten. Riccia natans schwimmt mit ihren breiten Thalluslappen auf der Oberfläche des Wassers nach Art der Lemnaceen (Fig. 449 C). Riccia fluitans (Fig. 449 A), vielleicht eine Sammelart von submersen Formen verschiedener terrestrischer Arten, hat dagegen schmale, reicher verästelte Thalluslappen. Diese beiden wasserbewohnenden Arten können aber auch auf Schlammboden niederliegende Rosetten bilden (Fig. 449 B). Der Thallus besteht an der Oberseite ähnlich wie bei Marchantia aus einem von schizogen entstandenen Luftkammern durchzogenen, assimilierenden Gewebe; an seiner Unterseite trägt er feine Rhizoïden und außerdem eine Reihe von quergestellten Ventralschuppen, die wie erstere sich an der Nährstoffaufnahme beteiligen. Beide Organe fehlen vollständig der submersen Form von Riccia fluitans.
Antheridien und Archegonien sind auf der Oberseite eingesenkt. Aus der Eizelle entwickelt sich nach der Befruchtung ein ungestieltes kugeliges Sporogon mit einschichtiger Wandung. Die Wandung wird vor der Sporenreife aufgelöst, und die Sporen werden durch Verwitterung der sie umgebenden Zellen des Thallus frei. Elateren fehlen.
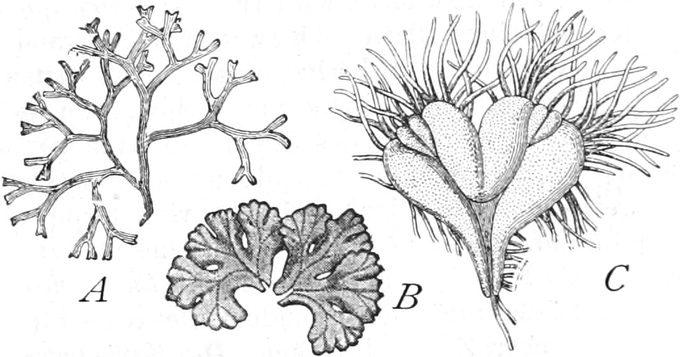
Fig. 449. A Riccia fluitans, untergetaucht schwimmende Form. B Riccia natans, Landform. Nat. Gr. C Riccia natans. Schwimmform mit langen Ventralschuppen. Vergr. 2. B Nach GOEBEL, C nach BISCHOFF.
3. Ordnung. Die Jungermanniales, meist kleine, auf Erde oder an Baumstämmen, in den Tropen auch auf Blättern von Waldpflanzen lebende Lebermoose, weisen in ihren einfacheren Formen einen breitlappigen Thallus wie Marchantia auf, z. B. die auf feuchtem Erdboden häufige Pellia epiphylla, oder einen schmal bandförmigen, dichotom verzweigten, ähnlich wie Riccia fluitans, so die an Baumstämmen oder Felsen lebende Metzgeria furcata (vgl. Fig. 94). Sodann gibt es Formen, deren breitlappiger, mit Mittelrippe versehener Thallus bereits eine schwache Ausbildung von blattähnlichen Gliedern an seinem Rande aufweist, so die erdbewohnende Blasia pusilla (Fig. 450). Die Mehrzahl aber besitzt eine deutliche Gliederung in ein niederliegendes oder aufstrebendes, reichverzweigtes, dorsiventrales Stämmchen und in einschichtige Blättchen ohne Mittelnerv, die in zwei Zeilen an den Flanken des Stämmchens mit schiefer Stellung ihrer Spreite angeordnet sind (Fig. 451). Bei gewissen Gattungen tritt zu diesen zwei Zeilen von Flankenblättern auch noch eine bauchständige Reihe von kleineren und anders beschaffenen Blättchen, Amphigastrien oder Bauchblättern, hinzu, so bei Frullania Tamarisci (Fig. 452), einem zierlich verzweigten, an Felsen und Baumstämmen häufigen Lebermoos von bräunlicher Farbe. Die Flankenblätter gliedern sich häufig in einen Oberlappen und einen Unterlappen. Der letztere erscheint bei gewissen Arten, die an ihren Standorten zeitweise der Gefahr des Vertrocknens ausgesetzt sind, sackartig ausgebildet und dient als kapillarer Wasserbehälter, so bei Frullania Tamarisci. Die Flankenblätter sind entweder oberschlächtig, wenn der Hinterrand eines Blattes von dem Vorderrand des nächstunteren überdeckt wird (Fig. 452 Frullania), oder unterschlächtig, wenn der Hinterrand eines Blattes über dem Vorderrand des nächstunteren liegt (Fig. 451).
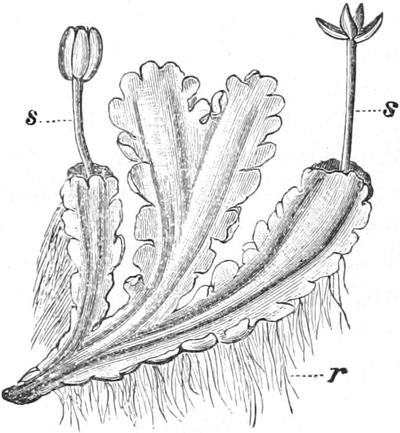
Fig. 450. Blasia pusilla mit Sporogon s, r Rhizoïden. Vergr. 2.
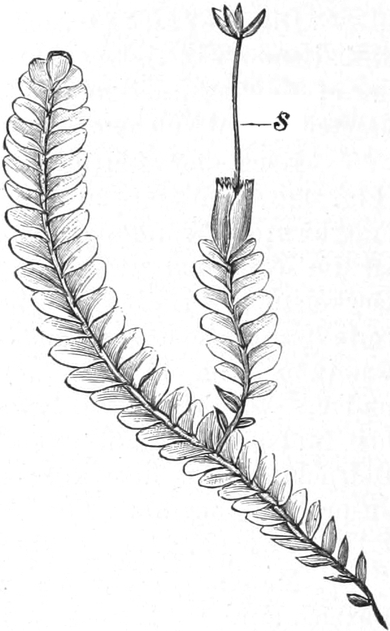
Fig. 451. Plagiochila asplenioides mit Sporogon s. Nat. Gr.
Das Sporogon besitzt einen langen zarten und weichen Stiel; es ist schon fertig ausgebildet, ehe es bei der rasch erfolgenden Streckung des Stiels die Archegoniumwand durchbricht und als häutige Scheide an seinem Grunde zurückläßt; es weist eine kugelige, meist in vier Klappen sich öffnende Kapsel auf, bildet keine Columella aus und erzeugt Sporen und Elateren. Bei einigen Gattungen (Pellia, Aneura) sind in der Kapsel Elaterenträger vorhanden, die aus Gruppen steriler elaterenähnlicher Zellen bestehen. Die Kapselwandzellen sind mit ringförmigen oder leistenartigen Verdickungen versehen oder gleichmäßig verdickt bis auf die dünnen Außenwände. Das Aufspringen erfolgt durch die Kohäsion des schwindenden Füllwassers unter Einbiegung der dünnen Außenwände.
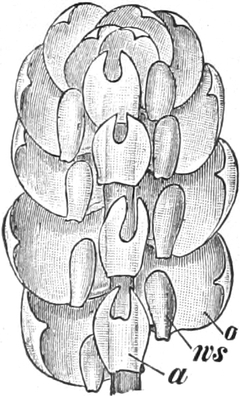
Fig. 452. Frullania Tamarisci, von unten. o Flankenblatt, ws als Wassersack ausgebildeter Unterlappen des Flankenblattes, a Amphigastrien. Vergr. 35.
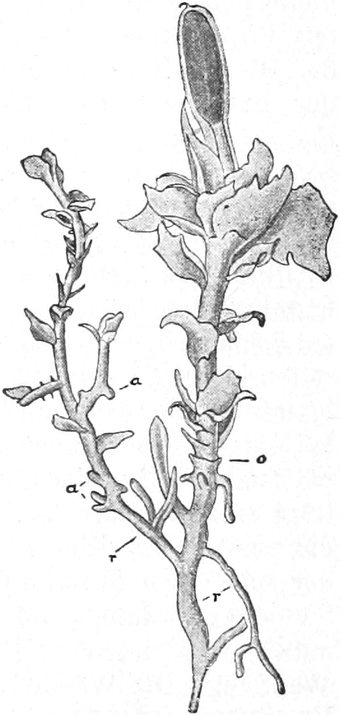
Fig. 453. Haplomitrium Hookeri. a Anlagen neuer Sprosse, r Rhizome, o untere Grenze des oberirdischen Sprosses. Nach GOTTSCHE.
Nach der Stellung der Sporogone gliedert sich die Mehrzahl der Jungermanniales in zwei Gruppen. 1. Bei den Anacrogynae wird der Scheitel zur Archegoniumbildung nicht mit verwendet, die Sporogone stehen rückenständig und sind an ihrer Basis von einem scheidenartigen Auswuchs des Thallus, einem Perichaetium, umgeben. Hierher gehören die thallösen Formen (Pellia, Metzgeria) und die Übergangsformen zu den beblätterten Formen (Blasia). 2. Bei den Acrogynae dagegen stehen die Archegonien und somit auch die Sporogone am Ende des Stengels oder seiner Äste und sind von einem aus besonders gestalteten Blättchen gebildeten, nach der Befruchtung heranwachsenden Perianth umhüllt. Hierher die dorsiventral beblätterten Formen (z. B. Plagiochila, Frullania und die artenreiche Gattung Jungermannia). 3. Eine vorgerückte Stellung nehmen die Haplomitrieae ein, die noch gewisse Beziehungen zu den Anacrogynen aufweisen. Sie werden nur durch zwei Gattungen vertreten, von denen Calobryum in den Tropen, Haplomitrium Hookeri (Fig. 453) als einzige Art in Europa, vielleicht als Überbleibsel präglazialer Lebermoose, vorkommt. Sie weichen von allen übrigen Lebermoosen ab durch radiären Bau ihrer dreizeilig oder ringsum beblätterten Sprosse. Die Sexualorgane sind bei ersterer Gattung in terminalen Ständen vereinigt, bei letzterer zwischen den oberen Blättern verteilt.
Die Laubmoose sind in ungemeiner Formenfülle in allen Zonen verbreitet, sie wachsen auf trockenem Erdboden, in Sümpfen, an Felsen, an Baumstämmen, in tropischen Wäldern auch als Epiphyten auf den Baumästen, seltener im Wasser, und zeigen dementsprechend sehr verschiedene Strukturen. Für sehr trockene Standorte sind besonders dichte Polster oder Rasen charakteristisch, während die typischen Bodenbewohner unserer Wälder in ausgebreiteten lockeren oder dichteren Filzen vegetieren. In feuchten Bergwäldern der Tropen und Subtropen besiedeln Laubmoose oft in unglaublichen Mengen die Äste in Form schwellender Polster oder in Form lang herabhängender Schleier[416]. Ausgedehnte Bestände bilden die Torfmoose in Mooren, ferner rasenbildende Arten (besonders Polytrichum) auf feuchtem Boden in den arktischen Moostundren.
Das reich verzweigte Protonema der Laubmoose erscheint dem bloßen Auge als ein feiner grüner Filz (Fig. 434). Es entsendet in den Boden Rhizoïden, chlorophyllfreie verzweigte Fäden, die sich durch schräge Stellung ihrer Querwände auszeichnen. Am Protonema entstehen die Knospen der Moospflänzchen als seitliche Ausstülpungen einzelner Zellen des Hauptfadens, meistens aber der Anfangszellen der Protonemazweige. Diese Ausstülpungen werden durch eine Querwand abgetrennt, teilen sich weiter in eine oder auch in zwei Stielzellen und eine anschwellende Endzelle, die bei ihrer weiteren Teilung die dreiseitig pyramidale Scheitelzelle des Moospflänzchens liefert[417]. Letzteres ist stets in Stengel und Blättchen gegliedert. Die Laubmoose unterscheiden sich leicht von den beblätterten Jungermanniaceen durch die spiralige Anordnung ihrer Blättchen, die nur selten zweizeilig gestellt sind. Bei solchen Laubmoosen, die niederliegende Stengel haben, sind die Blättchen bei spiraliger Anordnung häufig einseitswendig oder gescheitelt, so daß zwar ein Gegensatz von Ober- und Unterseite, aber in anderer Weise als bei den Lebermoosen, zustande kommt.
Der Moosstengel wird von Zellen aufgebaut, die nach der Oberfläche zu enger und dickwandiger werden. Bei verschiedenen Gattungen, z. B. bei Polytrichum, bei Mnium (Fig. 96), findet sich in der Achse des Stengels ein zentrales Leitbündel aus langgestreckten Zellen vor. Diese Wasser und organische Substanzen leitenden Bündel stehen auf niederer Stufe der Differenzierung: sie führen weder echte Siebröhren noch echte Gefäße, enthalten aber neben lebendigen Elementen auch plasmaleere wasserhaltige Zellen. Sie fehlen ganz den Sphagnaceen oder Torfmoosen, die an sumpfigen Standorten leben. Der Stengel dieser Formen zeigt eine eigentümliche Ausbildung der peripherischen Zellschichten, die plasmaleer sind, mit großen offenen Poren untereinander und mit der Atmosphäre in Verbindung stehen und spiralige Verdickungsleisten als Aussteifungen an ihren Wandungen besitzen, somit einen Bau aufweisen, der sie befähigt, Wasser mit Leichtigkeit aufzusaugen und als kapillare Wasserbehälter und Leitungsbahnen zu dienen.
Die Blätter mancher Moose bestehen nur aus einer Schicht von polygonalen chlorophyllführenden Zellen; meist aber sind sie in der Mittellinie mehrschichtig und von einem aus dem Zentralstrang des Stengels entspringenden Bündel langgestreckter Zellen durchzogen. Den Torfmoosblättern geht letzteres ab, dagegen sind sie eigenartig differenziert, indem ihre einschichtige Blattfläche ähnliche plasmaleere wasserspeichernde Zellen führt wie die Stengelperipherie. Diese Zellen sind hier groß, langgestreckt und ebenfalls mit queren Verdickungsleisten und offenen Poren versehen. Zwischen ihnen bilden die chlorophyllhaltigen, schmalen Zellen ein zusammenhängendes Netz. Außer den Torfmoosen zeigt auch noch die Familie der Leucobryaceen eine ähnliche Differenzierung der Blattzellen (z. B. Leucobryum glaucum).
Eigenartigen Blattbau, der sich als Anpassung an die Wasseraufnahme und Schutz gegen Trockenheit darstellt, besitzt unter den Laubmoosen u. a. Polytrichum commune, der gemeine Widerton, dessen mehrschichtige Blätter auf der Oberseite zahlreiche einschichtige, dichtstehende Längslamellen aus chlorophyllhaltigen Zellen tragen, die das assimilierende Gewebe vorstellen und in den Zwischenräumen Wasser leiten und festhalten. Bei Trockenheit faltet sich das Blatt mittels Kohäsionsmechanismus zusammen und legt sich dicht dem Stamm an, wodurch die zarten Lamellen in eine vor übermäßiger Transpiration geschützte Lage gebracht werden[418]. Überhaupt können viele Laubmoose unbeschadet große Trockenheit vertragen.
Am Grunde des Stengels entspringen die fadenförmigen, verzweigten Rhizoïden (Fig. 456, 458), die chlorophyllfrei sind, sonst aber den gleichen Bau aufweisen wie das Protonema und auch gelegentlich zu solchem auswachsen und neue Moospflänzchen in derselben Weise wie dieses erzeugen können.
Die Sexualorgane stehen bei den Laubmoosen in Gruppen an den Enden der Hauptachsen oder kleiner Seitenzweiglein, umgeben von den obersten Blättchen, die oft als besondere Hüllblättchen, Perichaetium, ausgestaltet sind (Fig. 458). Zwischen den Sexualorganen steht gewöhnlich eine Anzahl von mehrzelligen, oft mit kugeligen Endzellen versehenen Safthaaren oder Paraphysen. Die Stände sind entweder zwitterig oder einhäusig oder zweihäusig. Bei gewissen getrenntgeschlechtlichen Laubmoosen erscheinen die aus besonderen Sporen hervorgehenden männlichen Pflanzen im Vergleich zu den weiblichen als winzige Zwergpflänzchen, die nach Bildung einiger weniger Blättchen bereits zur Erzeugung der Antheridien übergehen[419]. Die Antheridien und Archegonien der Laubmoose unterscheiden sich entwicklungsgeschichtlich von denen aller übrigen Archegoniaten durch den Aufbau ihres Körpers aus Segmenten einer bei ersteren Organen zweischneidigen, bei letzteren aber dreischneidigen Scheitelzelle.
Das Sporogon der Laubmoose[420] weist in seiner Kapsel ein zentrales Säulchen aus sterilem Gewebe, die Columella, auf, in deren Umkreis der Sporensack mit den Sporen liegt (Fig. 460). Die Columella fungiert als Nährstoffzuleiter und Wasserspeicher für die sich bildenden Sporen, denen die plasmareichen Zellen der Sporensackwandung die Nährstoffe zuführen. Elateren werden nie gebildet. Im jungen Sporogon liegt außerhalb des Sporensackes ein wohlentwickeltes Assimilationsgewebe, das von einer Epidermis bedeckt wird. Bei den meisten Laubmoosen sind im unteren Teile der Kapselwandung Spaltöffnungen ausgebildet. Die reife Kapsel zeigt eine Fülle eigenartiger Strukturen, die zu ihrer Öffnung dienen und das Ausstreuen der Sporen vermitteln. Der Kapselstiel, die Seta, hebt die Kapsel empor, so daß der Wind die Sporen leicht weithin verbreiten kann. Im einzelnen weist die Gestaltung des Sporogons bei den drei Ordnungen der Laubmoose, nämlich den Sphagnales, den Andreaeales und den Bryales, mancherlei Verschiedenheiten auf.
1. Ordnung. Sphagnales[421]. Sie umfassen nur die Familie der Sphagnaceen oder Torfmoose mit der einzigen, allerdings sehr formenreichen Gattung Sphagnum. Sie leben an sumpfigen Orten und bilden große Polster, die an ihrer Oberfläche von Jahr zu Jahr weiterwachsen, während die tieferen Schichten absterben und schließlich in Torf übergehen. Die Stämmchen verzweigen sich reichlich; ein Teil ihrer Zweige wächst aufwärts und bildet das gipfelständige Köpfchen, ein anderer abwärts und umhüllt den unteren Teil des Stämmchens (Fig. 454 A). Diese abwärtswachsenden Zweige sind peitschenförmig gestreckt. Ein Zweig unter dem Gipfel entwickelt sich alljährlich ebenso stark wie der Muttersproß, der damit eine falsche Gabelung erhält. Indem nun die Stämmchen von untenher allmählich absterben, werden die nacheinander erzeugten Tochtersprosse zu selbständigen Pflanzen. Einzelne Zweige des Köpfchens fallen durch ihre besondere Gestalt und Färbung auf; sie erzeugen die Geschlechtsorgane. Die männlichen Zweige tragen neben den Blättern die runden gestielten Antheridien, die weiblichen Zweige an ihrer Spitze die Archegonien. Die Sporogone entwickeln nur einen kurzen Stiel mit angeschwollenem Fuß, sind längere Zeit von der Archegoniumwand oder Kalyptra eingeschlossen und sprengen diese an der Spitze, lassen sie also an ihrer Basis als Scheide zurück (B, C). In der kugeligen Kapsel wird die hier halbkugelige Columella von dem sporenbildenden Gewebe (spo) kuppelförmig überlagert. Die Kapsel öffnet sich mittels eines abspringenden Deckels. Das reife Sporogon ist mit seinem erweiterten Fuß in das angeschwollene obere Ende einer nach der Befruchtung des Archegoniums sich emporstreckenden stielförmigen Verlängerung der Stengelspitze, des Pseudopodiums (ps), eingesenkt. Auf den eigentümlichen Bau der Blätter und der Stengelrinde ist bereits oben hingewiesen. Eigenartig sind die Vorkeime der Torfmoose gestaltet. Die Spore keimt zu einem kurzen Faden aus, der dann in eine Zellfläche übergeht, auf der die Stammknospen entstehen.
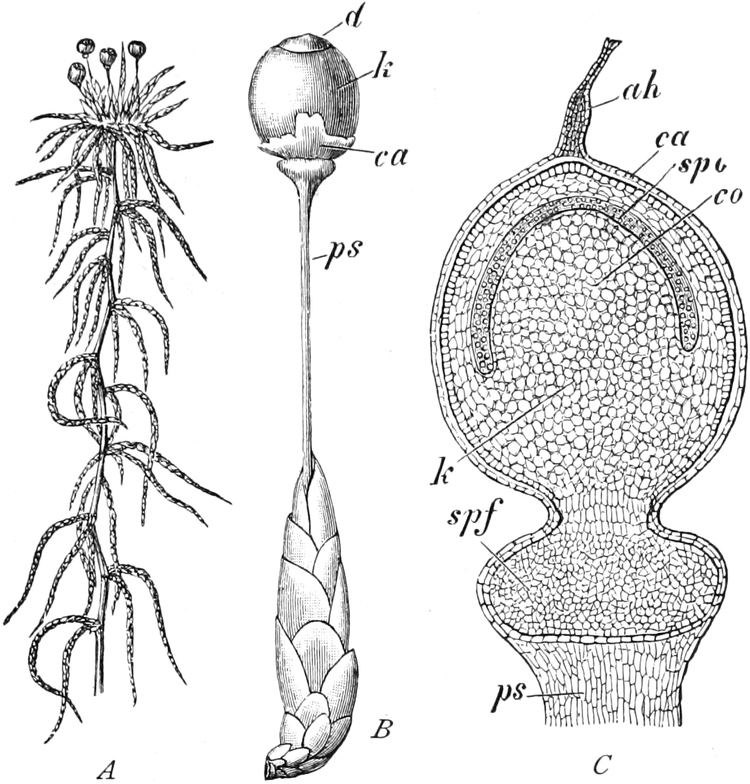
Fig. 454. A Sphagnum fimbriatum. Mit vier reifen Sporogonen. Nat. Gr. — B Sphagnum squarrosum. Reifes Sporogon am Ende eines kleines Zweiges, ca durchrissene Kalyptra, d Deckel. Vergr. — C Sphagnum acutifolium. Junges Sporogon im Längsschnitt, ps Pseudopodium, ca Archegoniumwand oder Kalyptra, ah Archegoniumhals, spf Sporogonfuß, k Kapsel, co Columella, spo Sporensack mit Sporen. B, C nach W. P. SCHIMPER.
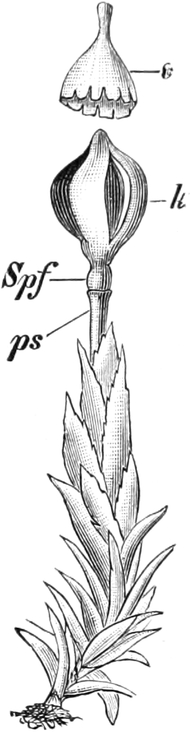
Fig. 455. Andreaea petrophila. ps Pseudopodium, Spf Sporogonfuß, k Kapsel, c Kalyptra. Vergr. 12.
2. Ordnung. Andreaeales. Sie umfassen nur die Gattung Andreaea, deren Arten kleine bräunliche Moospolster an Felsen vorstellen. Die Sporogone stehen an der Spitze des Stengels. Die anfangs von einer mützenförmigen Kalyptra bedeckte Kapsel öffnet sich in eigentümlicher Weise mittels vier an der Spitze und Basis verbundener Klappen (Fig. 455); der Stiel bleibt kurz und besitzt an seiner Basis einen erweiterten Fuß (Spf), welcher, wie bei Sphagnum, in ein Pseudopodium (ps) eingesenkt ist. Die Columella ist wie bei Sphagnum von dem Sporensack kuppelförmig überlagert. Das Protonema ist anfangs ein kleiner Zellkörper, der zu einem verzweigten bandförmigen Gebilde auswächst.
3. Ordnung. Bryales[422]. Hierzu gehört die Mehrzahl der Familien. Die Moosfrucht erreicht bei ihnen höchste Differenzierung. Das Sporogon besteht aus einem elastischen Stiel, der Seta (Fig. 456 s), die am Grunde mit ihrem Fuß in das Gewebe der Mutterpflanze eingesenkt ist, und aus der Kapsel, die anfangs von der später abfallenden Haube oder Kalyptra bedeckt wird. Die Haube geht aus dem den oberen Teil des Sporogonembryos umschließenden Archegoniumbauch hervor, während der Hals vertrocknet und als Spitze noch auf ihr sitzen bleibt. Die Bauchwand löst sich an ihrer Basis an einer vorgebildeten Trennungslinie mit dem Beginn der Sporogonstreckung los und dient als Schutz für die heranreifende Kapsel. Sie besteht aus mehreren Schichten von Zellen, erzeugt bei manchen Moosen, namentlich trockenen Standortes, Haare, die ihrem Bau nach Protonemafäden begrenzten Wachstums entsprechen. Bei gewissen Moosen (z. B. Funaria) erweitert sich die junge Haube bauchig und dient als Wasserspeicher für die junge Kapsel[423]. Der oberste Teil der Seta unter der Kapsel wird als Apophyse bezeichnet. Sie ist bei Mnium klein und nur durch eine ganz schwache Einschnürung von der Kapsel abgesetzt (Fig. 462 A, ap), dagegen bei Polytrichum commune in Form eines Ringwulstes (Fig. 456 ap) und am auffälligsten, als rot oder gelb gefärbter Kragen, bei den nordischen Splachnum-Arten entwickelt, bei denen sie durch ihre Färbung und zugleich auch durch Abscheidung aasartig riechender Duftstoffe im Dienste der Anlockung von sporenverbreitenden Fliegen steht[424]. Die Kapsel wird der Länge nach von der Columella durchzogen, in deren Umkreis der Sporensack liegt. Der obere Teil der Kapselwandung ist in Form eines Deckels mit oder ohne schnabelartige Spitze ausgebildet. Unterhalb des Deckelrandes ist eine schmale Zone der Kapselwandungszellen als sog. Ring differenziert. Der Ring, dessen Zellen aufquellenden Schleim enthalten, vermittelt das Absprengen des Deckels bei der Reife. Am Rande der Kapselöffnung, zunächst von dem Deckel bedeckt, befindet sich bei den meisten Laubmoosen ein in der Regel von Zähnen gebildeter Mundbesatz, das Peristom, das den übrigen Moosen fehlt.
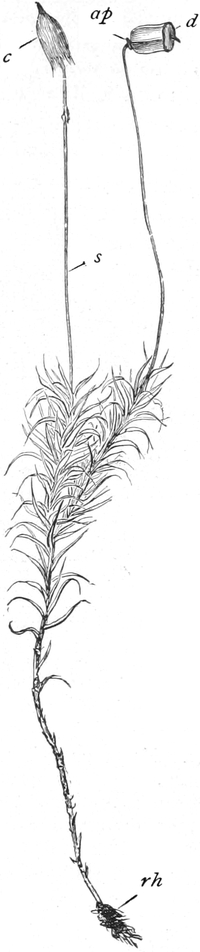
Fig. 456. Polytrichum commune, verzweigtes Exemplar (Stengel in der Regel einfach), rh Rhizoïden, s Seta, c Kalyptra, ap Apophyse, d Deckel. Nat. Gr.
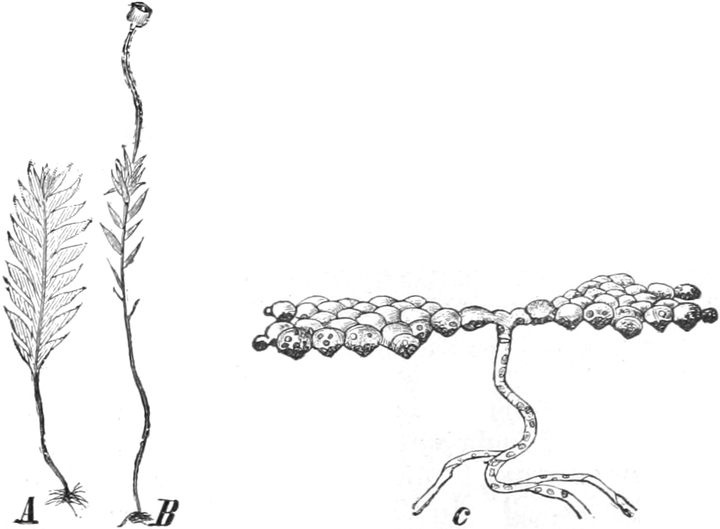
Fig. 457. Schistostega osmundacea. A Sterile, B fertile Pflanze. Vergr. 5. C Protonema. Vergr. 90. C Nach NOLL.
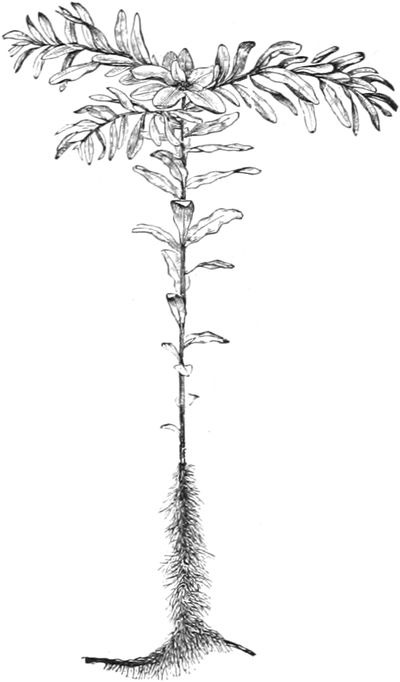
Fig. 458. Mnium undulatum. Orthotroper Sproß mit endständigem, von Hüllblättchen umgebenem Antheridiumstand. Seitensprosse plagiotrop. Nach GOEBEL.
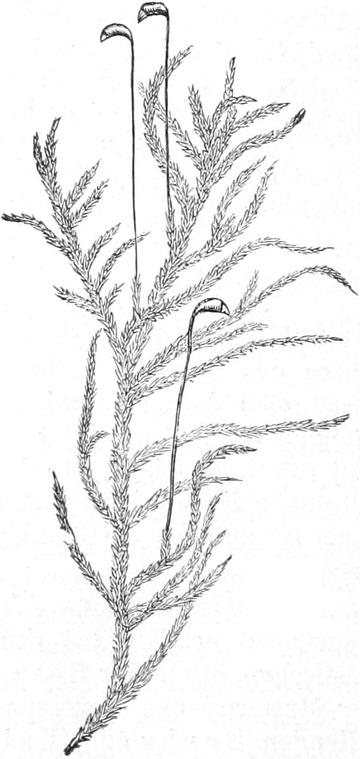
Fig. 459. Scleropodium purum. Nat. Gr.
Das Peristom von Mnium hornum (Fig. 462) möge als Beispiel dienen; es ist doppelt. Das äußere besteht aus 16 am Innenrande der Kapselwandung inserierten, quergestreiften Zähnen. Das innere Peristom liegt dem äußeren dicht an und setzt sich zusammen aus schmalen Lamellen und Fäden, die mit Querleisten an der Innenfläche besetzt und in ihrem unteren Teile zu einer gemeinsamen Membran verschmolzen sind. Zwischen zwei äußeren Peristomzähnen stehen jedesmal zwei Wimpern des inneren Peristoms.
Die Entwicklungsgeschichte ergibt, daß die Zähne und Wimpern aus einer der an die Innenseite des Deckels anschließenden Zellschichten durch stellenweise Verdickung der gegenüberstehenden Wände angelegt werden (Fig. 461), und zwar die Zähne aus den Außenwänden, die Wimpern aus den inneren Wänden dieser Zellschicht. Die Querleisten entsprechen den Ansatzstellen der Querwände. Bei dem Öffnen der Kapsel trennen sich die Zähne und Wimpern in den dünnbleibenden Wandungsstellen.
Bei den Polytrichaceen entstehen die Peristomzähne nach einem besonderen Typus; sie bauen sich hier aus langgestreckten verdickten ganzen Zellen auf.
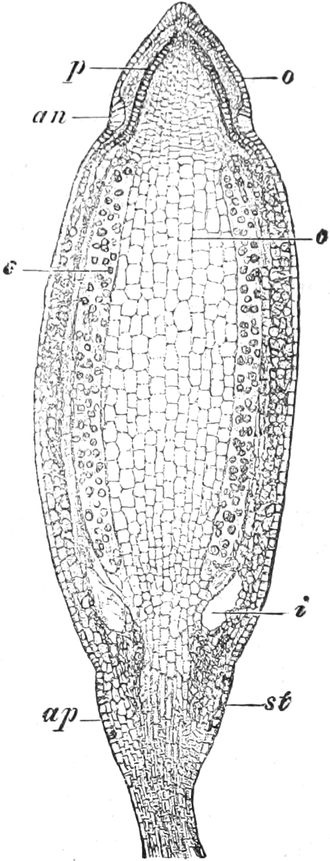
Fig. 460. Mnium hornum. Medianer Längsschnitt durch ein halbreifes Sporogon. o Deckel, p Peristom, an Ring, c Columella, s Sporensack mit Sporen, i ringförmiger Hohlraum, ap Apophyse, st Spaltöffnung. Vergr. 18. Nach STRASBURGER.
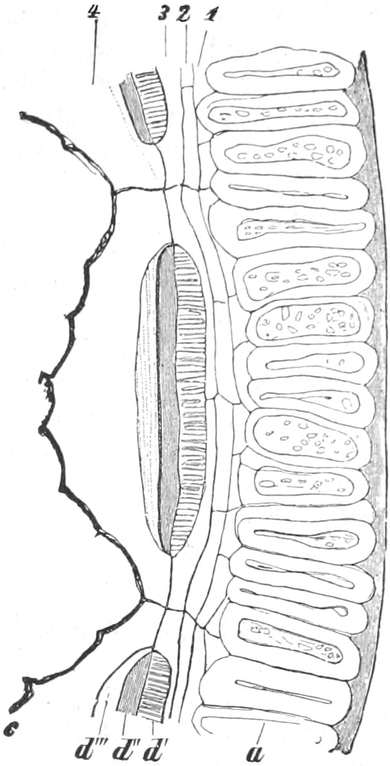
Fig. 461. Mnium hornum. Querschnitt durch den Kapselrand. a Zellen des Ringes, 1–4 aufeinanderfolgende Zellschichten, d′ die in der dritten, d″ die in der vierten Zellschicht entstandene Verdickungsmasse der Zähne, d‴ vorspringende Querleisten, c verschmolzene Wimpern. Vgr. 240. Nach STRASBURGER.
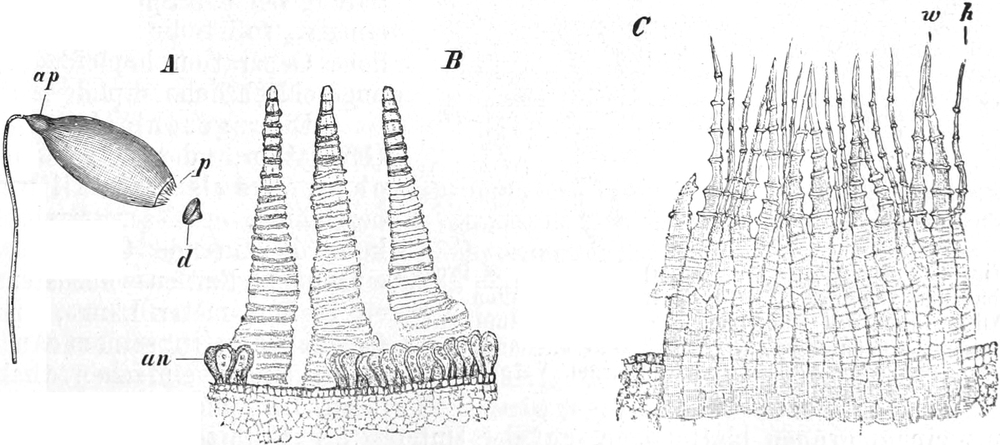
Fig. 462. Mnium hornum. A Kapsel mit einem Stück der Seta, ap Apophyse, p Peristom, d abgesprengter Deckel. B Drei Zähne des äußeren Peristoms von außen gesehen, an Ring. C Inneres Peristom, w die breiteren, h die schmäleren Wimpern, von innen gesehen. A Vergr. ca. 4. B, C Vergr. 60.
Im Bau des Peristoms herrscht große Mannigfaltigkeit. Seine Zähne führen hygroskopische Bewegungen einwärts und auswärts aus und bewirken so ein allmähliches Ausstreuen der Sporen aus der Kapsel.
Gestalt der Kapsel, des Peristoms, des Deckels und der Haube geben die wichtigsten Gattungsunterschiede ab. Die Bryales teilt man bislang in zwei übrigens kaum natürliche, große Unterordnungen nach der Stellung der Archegonien oder der Kapseln ein.
a) Bei den Acrocarpi stehen die Archegonien und somit auch die Sporogone am Ende des Hauptstengels. Von häufigeren Arten gehören hierher Mnium undulatum (Fig. 458) und hornum, Polytrichum commune (Fig. 456), Funaria hygrometrica. Eine sehr eigentümliche Ausbildung des Protonemas treffen wir bei dem in Erdlöchern oder in Höhlen lebenden Leuchtmoos Schistostega osmundacea (Fig. 457). Die fertilen Sprosse dieses Mooses sind einfach oder verzweigt, spiralig beblättert und tragen auf langer Seta eine peristomlose Kapsel; die sterilen Sprosse dagegen sind zweizeilig beblättert. Der Vorkeim allein leuchtet smaragdgrün, indem seine nach unten linsenförmig ausgebauchten Zellen die durch die Chlorophyllkörner hindurch gehenden Lichtstrahlen reflektieren. Bei einigen winzigen Moosen (Archidium, Phascum, Ephemerum) erfährt das Sporogon bedeutende Vereinfachung seiner Struktur; Deckel-, Ring- und Peristombildungen unterbleiben, und die Kapselwand öffnet sich unregelmäßig durch Verwesen.
b) Bei den Pleurocarpi wachsen die Hauptachsen unbegrenzt weiter, und die Archegonien, somit auch die Sporogone, stehen auf besonderen, kurzen Seitenzweigen (Fig. 459). Hierher gehören zahlreiche, meist reich verzweigte, Rasen oder Pilze bildende Arten, darunter unsere größten Waldmoose, die den Familien der Neckeraceen und Hypnaceen entstammen, ferner auch die in Bächen und Flüssen flutende Fontinalis antipyretica.
Die Pteridophyten umfassen die Farne nebst den Wasserfarnen, die Schachtelhalme und die Bärlappgewächse und stellen die am höchsten entwickelten Kryptogamen vor. Wie bei den Bryophyten vollzieht sich auch hier der Entwicklungsgang in zwei miteinander abwechselnden Generationen. Die geschlechtliche Generation trägt Antheridien und Archegonien, die ungeschlechtliche geht aus der befruchteten Eizelle hervor und erzeugt ungeschlechtliche einzellige Sporen. Aus der Keimung der letzteren entsteht wieder die geschlechtliche Generation. Da die Reduktionsteilung bei der Sporenbildung eintritt, so ist die geschlechtliche Generation haploid, die ungeschlechtliche diploid.
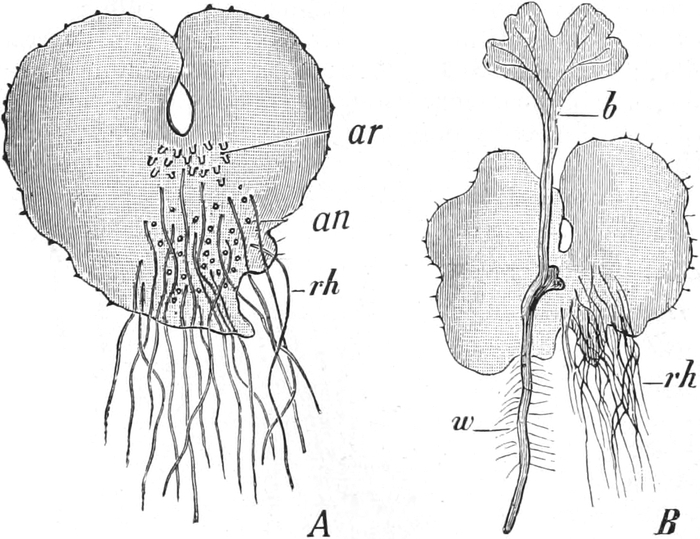
Fig. 463. Dryopteris (Aspidium) filix mas. A Prothallium von der Unterseite mit Archegonien ar, Antheridien an, Rhizoïden rh. B Prothallium mit jungem, aus einer befruchteten Eizelle entstandenem Farnpflänzchen, b erstes Blatt, w Wurzel. Vergr. ca. 8.
Die geschlechtliche Generation, der Gametophyt, wird als Prothallium bezeichnet. Dieses erreicht keine bedeutende Größe, bei einzelnen Farnen höchstens einige Zentimeter Länge, und gleicht dann in seinem Aussehen einem einfachen thallösen Lebermoos; es besteht aus einem grünen blattartigen, auf der Unterseite mit Rhizoïden am Boden befestigten Thallus (Fig. 463 A). In einigen Fällen ist das Prothallium verzweigt fadenförmig ausgebildet, in anderen Fällen halb oder ganz unterirdisch in Form von knollenförmigen, farblosen Gewebekörpern mit saprophytischer Lebensweise und mit endophytischen Fadenpilzen nach Art der Mykorrhizen; in gewissen Abteilungen der Pteridophyten endlich erleidet es eine Rückbildung und bleibt in der Spore mehr oder weniger eingeschlossen. An dem Prothallium entstehen die Geschlechtsorgane, Antheridien (Fig. 470, 477), in denen zahlreiche, meist schraubig gewundene, vielzilige oder nur zweizilige Spermien erzeugt werden, und Archegonien (Fig. 471, 478), die je eine Eizelle ausbilden. Die Befruchtung ist wie bei den Moosen nur in Wasser, also bei Benetzung der Prothallien möglich. Eine aus dem Archegonium in das umgebende Wasser ausgeschiedene Substanz induziert den Spermien die Bewegungsrichtung nach der Eizelle. Das spezifische Reizmittel der Samenfäden ist für Farne, Salvinia, Equisetum, Selaginella und Isoëtes Äpfelsäure oder deren Salze, für Lycopodium Zitronensäure. Aber auch andere Dikarbonsäuren, gewisse Metallsalze, sogar auch einige Alkaloide vermögen als Lockmittel zu dienen, und die einzelnen Gattungen zeigen dabei verschiedenes Verhalten. Die chemotaktischen Sensibilitäten der Samenfäden können sich auf mehrere Stoffe erstrecken[427].
Nach der Befruchtung der Eizelle durch ein Spermium entwickelt sich aus ihr, wie bei den Bryophyten, die ungeschlechtliche Generation, hier das kormophytische Farnkraut.
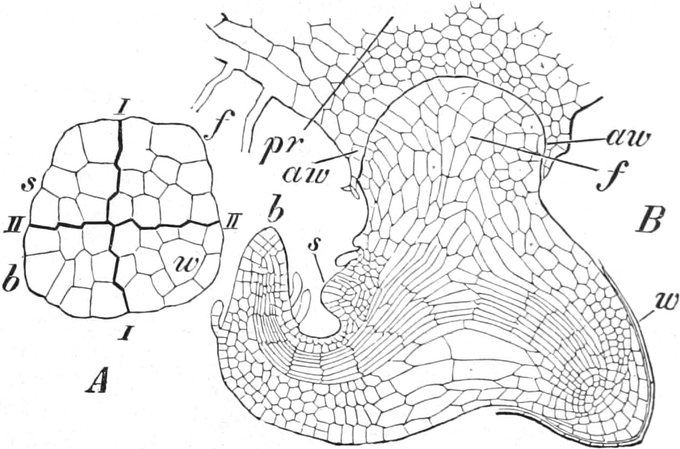
Fig. 464. A Pteris serrulata. Aus dem Archegonium befreiter Embryo im Längsschnitt. I Basalwand, II senkrecht zu dieser stehende Quadrantenwand, f Anlage des Fußes, s des Stammscheitels, b des ersten Blattes, w der Wurzel. Nach KIENITZ-GERLOFF. B Pteridium aquilinum. Weiter entwickelter Embryo, mit dem Fuß f im erweiterten Archegoniumbauch, aw, steckend, pr Prothallium. Vergr. Nach HOFMEISTER.
Die ungeschlechtliche Generation, der Sporophyt, ist bei den Pteridophyten eine in äußerer Gliederung und innerer Struktur hochdifferenzierte Pflanze mit Stengel, Blättern und Wurzeln. Bei der Mehrzahl der Pteridophyten, so bei den Farnen und Schachtelhalmen, teilt sich die befruchtete Eizelle, nachdem sie sich mit einer Zellulosemembran umgeben hat, zunächst durch eine Basalwand in zwei Zellen und jede dieser dann durch zwei zur Basalwand senkrecht stehende, sich kreuzende Wände in Oktanten. Unter weiterer Teilung dieser acht Zellen entsteht ein noch im Archegonium eingeschlossener Gewebekörper, an welchem der Stammscheitel, das erste Blatt, die erste Wurzel und neben dieser ein der Keimpflanze der Pteridophyten eigentümliches Organ, der sog. Fuß, angelegt werden (Fig. 464 f). Der Fuß ist ein höckerartig vorspringender Gewebekörper, mit welchem die junge Keimpflanze in dem durch Wachstum sich erweiternden Archegoniumbauch eingefügt bleibt; er sorgt als Saugorgan für ihre Ernährung, bis die Wurzel in den Boden gedrungen ist, die ersten Blätter sich entfaltet haben und die Keimpflanze somit selbständig sich ernähren kann. Bei manchen Bärlappgewächsen (Lycopodium, Selaginella) wird in verschiedener Weise ein ein- oder wenigzelliger Embryoträger oder Suspensor gebildet. Das Prothallium geht nach Entwicklung der Keimpflanze in der Regel bald zugrunde. Aus dem Stammscheitel des Embryo entwickelt sich ein einfacher oder sich gabelig, ohne Beziehung zu den Blättern verzweigender, aufrechter, radiärer oder niederliegender, dorsiventraler Stamm, der in schraubiger oder quirliger Anordnung die Blätter trägt. Die Farnpflanzen bilden echte, aus verschiedenartigen Geweben aufgebaute Wurzeln, wie wir sie auch bei den Samenpflanzen vorfinden. Auch die Blätter stimmen im wesentlichen in ihrer Struktur mit denen der Phanerogamen überein. Die drei Grundorgane wachsen bei den meisten Pteridophyten mittels Scheitelzellen heran (Fig. 100, 101, 153); bei Lycopodium und Isoëtes läßt sich im Vegetationskegel keine solche mehr erkennen, während Selaginella Scheitelzellwachstum und Übergänge zu Wachstum mittels zahlreicher Initialzellen zeigt. Stämme, Wurzeln und Blätter werden von wohl differenzierten Leitbündeln durchzogen, die hier zum ersten Male im Pflanzenreich erscheinen und als wasserleitende Elemente vorwiegend Treppentracheïden führen. Die Leitbündel im Stamm und im Blatt der Pteridophyten sind nach verschiedenen Typen, überwiegend aber nach dem konzentrischen und nach dem radialen, gebaut (vgl. S. 85 ff., Fig. 465, 466). Sekundäres Dickenwachstum durch Kambiumtätigkeit kommt bei den jetzt lebenden Familien nur ganz vereinzelt vor, zeichnete aber die Stämme von gewissen fossilen Pteridophytengruppen aus.
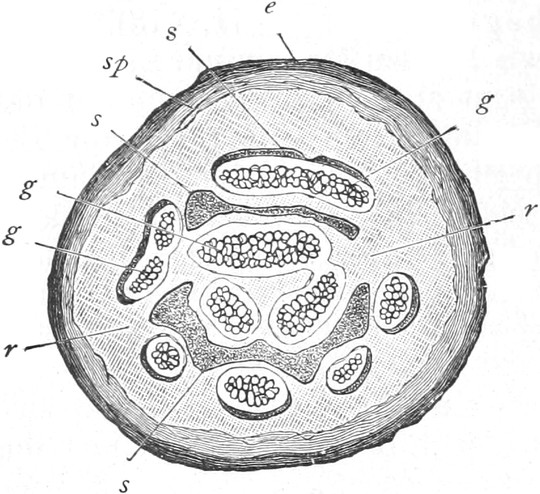
Fig. 465. Querschnitt durch das Rhizom von Pteridium (Pteris) aquilinum. g Leitbündel, s Sklerenchymplatten, sp peripherischer Sklerenchymfaserring, r Rinde, e Epidermis. Vergr. 7.
Fig. 466. Querschnitt durch den Stengel von Lycopodium complanatum. ep Epidermis, ve, vi und pp äußere, innere und innerste Partie der primären Rinde. Diese umgibt das aus mehreren Holzteilen und Siebteilen zusammengesetzte zentrale Leitbündel, in welchem sc Treppentracheïden, sp Ring- und Schraubentracheïden, v Siebteile sind. Vergr. 26. Nach STRASBURGER.
Fig. 467. Blattaderung bei Farnen. A Adiantum capillus veneris (Venatio Cyclopteridis). B Asplenium adiantum nigrum (V. Sphenopteridis). C Asplenium esculentum (V. Goniopteridis). D Polypodium serpens (V. Marginariae). E Polypodium nereifolium (V. Goniophlebii). F Onoclea sensibilis (V. Sageniae).
Der Leitbündelverlauf in den Blättern, die Venation, liefert wichtige Merkmale für die systematische Gruppierung namentlich bei den Farnen (Fig. 467). Während in den einfachen Blättern der Schachtelhalme und Bärlappe nur ein Mittelnerv vorhanden ist, verzweigen sich in den Farnblättern die Nerven in mannigfaltigster Weise, entweder gabelig oder fiederig und mit freien Ästen, oder sie anastomosieren zum Teil zu einem System von Maschen. In diesen polygonalen Maschen können die letzten Auszweigungen blind endigen.
An den Blättern, in einzelnen Fällen in den Blattachseln, werden auf ungeschlechtlichem Wege die Sporen in besonderen Behältern oder Sporangien erzeugt (Fig. 468). Die sporangientragenden Blätter heißen Sporophylle. Die Sporangien umschließen das sporogene Gewebe, dessen Zellen sich abrunden, voneinander loslösen und die Sporenmutterzellen darstellen, die eine Reduktionsteilung ihrer Kerne ausführen und je vier oft tetraëdrisch angeordnete Sporen (Sporentetraden) liefern. Im Umkreis des sporogenen Gewebes befinden sich plasmareiche, die Ernährung der Sporen vermittelnde Zellen, sog. Tapetenzellen, die bei den Lycopodinen erhalten bleiben, bei Farnen und Schachtelhalmen aber ihre Membranen auflösen und sich zu einem die Sporenmutterzellen umgebenden Periplasmodium vereinigen, dessen Zellkerne eine Vermehrung durch amitotische Teilungen erfahren. Es wandert dann zwischen die sich aus dem Tetradenverband lösenden jungen Sporen ein, ernährt sie, beteiligt sich an der Bildung der Sporenhäute und wird dabei aufgebraucht[428]. Die Wand der reifen Sporangien ist entweder einschichtig oder mehrschichtig. Die jungen Sporenzellen umgeben sich bei ihrer Lösung aus dem Tetradenverband zunächst mit einer kutinisierten Membran, dem Exospor, innerhalb dessen eine dünne Zellulosehaut, das Endospor, abgeschieden wird. In vielen Fällen wird dem Exospor von dem Periplasmodium noch ein Perispor aufgelagert, so bei den Schachtelhalmen, Wasserfarnen und gewissen Farnkräutern.
Fig. 468. Entwicklung des Sporangiums von Asplenium. A Erste Teilungen der aus einer Oberflächenzelle hervorgehenden Anlage. B Teilung in peripherische Wandanlage w und zentrale Zelle ar (Archespor), die bereits eine Tapetenzelle t abgeteilt hat. C Älteres Stadium. Das Archespor hat sich in Tapetenzellen und sporogenes Gewebe sp geteilt. Vergr. 300. Nach SADEBECK.
Bei der Mehrzahl der Pteridophyten sind die Sporen von gleicher Beschaffenheit, und bei der Keimung geht aus ihnen ein Prothallium hervor, an dem sowohl Antheridien als auch Archegonien entstehen. In gewissen Fällen können aber auch die Prothallien diözisch sein. Diese Trennung der Geschlechter erstreckt sich bei einigen Pteridophytengruppen auch schon auf die Sporen und führt zur Ausbildung von zweierlei Formen von Sporen, Makrosporen, die in Makrosporangien entstehen und bei der Keimung nur weibliche Prothallien liefern, und Mikrosporen, die in Mikrosporangien erzeugt werden und männlichen Prothallien den Ursprung geben. Danach hat man also zwischen gleichsporigen oder isosporen (oder homosporen) und verschiedensporigen oder heterosporen Ordnungen zu unterscheiden, ein Unterschied, der aber nicht zur Gesamteinteilung verwertet werden kann, da er sich in gleicher Weise in systematisch getrennten Klassen, also mehrmals, herausgebildet hat.
Die Übereinstimmungen in der Struktur der Antheridien, der Archegonien und der Sporenmutterzellen sprechen für Verwandtschaft der Farnpflanzen mit den Moosen. Obwohl beide Gruppen ihren phylogenetischen Ausgang aus einer gemeinsamen Algengruppe (vgl. S. 421) genommen haben mögen, müssen wir getrennte Weiterentwicklung annehmen. Vor allem kann der Farnsporophyt nicht von dem ihm entsprechenden Moossporophyten, dem Sporogon, abgeleitet werden. Während dieses, ohne vegetative Ausgliederungen, frühzeitig mit der Sporenbildung seinen Abschluß erreicht, gliedert sich der Farnembryo in Stamm, Blatt und Wurzel. Als eine ganz neue Struktur erscheinen in den Geweben der Farnpflanze die Tracheïden, deren Besitz sie befähigte, zu größeren, reich gegliederten und sogar zu baumartigen Landpflanzen sich weiter zu entwickeln, im Gegensatz zu den Moosen, die infolge ihres einfachen zelligen Aufbaus und des Mangels an ausgiebigen Wasserbahnen keine großen Dimensionen erreichen können. Die Farnpflanze geht erst in einem späteren Stadium zur Erzeugung der Sporen über. Die Sporenmutterzellen werden im Innern besonderer Blattausgliederungen angelegt; diese heißen zwar allgemein noch „Sporangien“, sind aber den Thallophyten-Sporangien nicht homolog. Daher würde es sich empfehlen, für die sog. Farnsporangien eine neue Bezeichnung (Sporotheken) zu wählen. Den Thallophytensporangien entsprechen vielmehr bei den Farnen und Moosen die Sporenmutterzellen, die am ehesten mit den Tetrasporangien der Braunalgen und Rotalgen verglichen werden können.
Der Gametophyt der Farnpflanzen schließt seine Entwicklung frühzeitig mit der Bildung von Geschlechtsorganen ab. Die typischen Farnprothallien erheben sich nicht über das Jugendstadium eines Thallus, während umgekehrt bei den Moosen gerade die geschlechtliche Generation eine fortschreitende Entwicklung aufweist[408].
Die Pteridophyten gliedern sich in folgende Klassen:
1. Filicinae, Farne. Stengel einfach oder verzweigt, mit wohlentwickelten, abwechselnden, meist reichgegliederten Blättern, die hier als Wedel bezeichnet werden. Sporophylle mit zahlreichen, der Unterseite entspringenden Sporangien, die entweder frei oder zu mehreren in Soris vereinigt oder in besonderen Blattabschnitten eingeschlossen sind. Spermien mit vielen Zilien.
Unterklasse Filicinae eusporangiatae. Reife Sporangien mit derber mehrschichtiger Wandung ohne Ring. Isospor.
Unterklasse Filicinae leptosporangiatae. Reife Sporangien mit einschichtiger Wandung. Ordnung. Filices, Farne im engeren Sinne. Isospor. Sporangien mit Ring. Ordnung. Hydropterides, Wasserfarne. Heterospor. Sporangien ohne Ring.
2. Equisetinae, Schachtelhalme. Stengel einfach oder quirlig verzweigt, mit quirlig gestellten, einfachen, selten gabelig geteilten, oder schuppenartigen, zu geschlossenen Scheiden verwachsenen Blättern. Sporophylle am Ende der Zweige zu einem ährenförmigen Sporangienstand vereinigt, schildförmig, auf der Unterseite mit mehreren Sporangien. Spermien mit vielen Zilien.
Ordnung. Equisetaceae. Schachtelhalme. Isospor. Krautige Pflanzen.
Ordnung. Calamariaceae. Schachtelhalmbäume. Isospor oder Heterospor. Baumartige Pflanzen. Ausgestorben.
3. Sphenophyllinae. Keilblattgewächse.
Ordnung. Sphenophyllaceae. Stengel schlank, quirlig beblättert. Sporophylle mit 1–4 Sporangien, in ährenförmigen Ständen. Isospor, vereinzelt heterospor. Ausgestorben.
4. Lycopodinae. Bärlappartige Gewächse. Stengel einfach oder gabelig verzweigt. Wurzeln gabelig verzweigt. Blätter einfach, meist abwechselnd gestellt. Sporangien derbwandige Kapseln, stets einzeln in den Achseln oder am Grunde der Oberseite der Sporophylle.
Ordnung. Lycopodiaceae. Bärlappe. Isospor. Spermien zweizilig. Kräuter mit gegabelten Stengeln.
Ordnung. Selaginellaceae. Selaginellen. Heterospor. Spermien zweizilig. Kräuter mit gegabelten Stengeln und kleinen Blättchen.
Ordnung. Psilotaceae. Homospor. Spermien vielzilig. Stengel krautig, gegabelt, mit abwechselnden einfachen oder schuppenförmigen Blättern. Statt Wurzeln Rhizome mit Wurzelhaaren. Sporophylle gegabelt, auf der Oberseite nahe der Basis je ein 2- oder 3-fächeriges Sporangium tragend. Isospor.
Ordnung. Isoëtaceae. Brachsenkräuter. Heterospor. Spermien vielzilig. Stengel knollig, mit Dickenzuwachs, einfach, Blätter pfriemlich.
Ordnung. Sigillariaceae. Siegelbäume, Heterospor. Baumartig. Stamm einfach oder wenig gegabelt. Ausgestorben.
Ordnung. Lepidodendraceae. Schuppenbäume. Heterospor. Reich gabelig verzweigte Bäume. Ausgestorben.
5. Pteridospermeae. Samenfarne. Pflanzen vom Habitus großer Farne, heterospor, mit Mikrosporangien und mit samenartigen Makrosporangien. Aus eusporangiaten Farnen hervorgegangen. Ausgestorben.
Zu den Farnen im weiteren Sinne gehört die Hauptmasse der heute lebenden Pteridophyten. Nach dem Bau ihrer Sporangien werden sie in zwei Unterklassen unterschieden. Bei den Eusporangiaten besteht die derbe Sporangienwand aus mehreren Zellschichten und öffnet sich mittels eines Längsrisses, bei den Leptosporangiaten dagegen ist sie im reifen Zustand nur einschichtig und reißt quer oder längs auf. Erstere haben am Grunde der Wedel Nebenblätter oder Scheiden, die den letzteren fehlen. Auch in der Beschaffenheit der Prothallien und im Bau der Sexualorgane zeigen sich Unterschiede. Die Sporen besitzen nur bei einigen Gruppen der Leptosporangiaten eine dem Exospor aufgelagerte äußere Hülle, das Perispor.
In früheren Erdperioden waren die Eusporangiaten reich vertreten; heute umfassen sie nur zwei Familien mit wenigen Gattungen. Allem Anschein nach stellen sie ältere Farntypen dar, die den Ausgangsformen der Filicinen noch am nächsten zu stehen scheinen. Neben ihnen erscheinen bereits in paläozoischer Zeit die Leptosporangiaten, von denen später, in der Kreideperiode und im Tertiär, die Hydropterides als kleine Gruppe sumpf- und wasserbewohnender Farne sich abzweigten. Bei diesen haben sich die bei allen übrigen Farnen noch gleichartigen Sporen in Mikro- und Makrosporen differenziert.
1. Unterklasse. Eusporangiatae.
Die 1. Ordnung, die Marattiaceen[430], vielleicht die primitivsten aller heutigen Farne, umfaßt etwa 20 stattliche tropische Farne mit dicken Stammknollen und meist sehr großen, an der Basis mit je zwei Nebenblättern versehenen Wedeln. Die Sporangien stehen an der Wedelunterseite in Gruppen, Sori, entweder frei (Angiopteris) oder zu einem in Fächern aufspringenden, kapselartigen, ovalen Gebilde verwachsen. Das Prothallium hat die Form eines lebermoosähnlichen, grünen, herzförmigen, zuweilen gegabelten, mehrschichtigen und langlebigen Thallus, dessen unterseits entspringende, fast ganz eingesenkte Sexualorgane wie bei folgender Ordnung beschaffen sind; seine Zellen beherbergen endophytische Fadenpilze.
Die 2. Ordnung, die Ophioglossaceen[431], enthält ebenfalls nur wenige Arten. Bei uns heimisch sind die Natterzunge, Ophioglossum vulgatum (Fig. 469 E) und verschiedene Arten der Mondraute, Botrychium (Fig. 469 A). Beide haben einen kurzen Stamm, an dem jährlich meist nur ein einziges, mit Blattscheide versehenes Blatt sich entfaltet, das bei ersterer Gattung zungenförmig, bei letzterer gefiedert ist. Diese Blätter tragen an ihrer Oberseite einen im oberen Teile des Stieles entspringenden fertilen Blattabschnitt, der bei Ophioglossum einfach zylindrisch ist und die Sporangien in zwei Reihen in das Gewebe eingesenkt trägt, bei Botrychium dagegen fiederartig verzweigt und mit großen rundlichen Sporangien auf seiner Innenseite dicht besetzt ist. Aus dem Verlauf der Leitbündel und gelegentlichen Rückschlagsbildungen läßt sich schließen, daß der fertile Blattabschnitt aus der Vereinigung zweier basaler Blattfiedern hervorgegangen ist.
Fig. 469. Botrychium Lunaria. A Sporophyt. 1⁄2 nat. Gr. B Prothalliumquerschnitt mit Antheridium an, Archegonium ar, Embryo em, Pilzfäden en. Vergr. 45. C Prothallium mit zwei Embryonen, deren Wurzeln hervortreten. Vergr. 16. D Embryo mit Wurzel 1 und 2 und Fuß. Vergr. 16. — Ophioglossum vulgatum. E Sporophyt mit Knospe für das nächste Jahr. 1⁄2 nat. Gr. F Prothallium. an Antheridien, ar Archegonien, k junge Keimpflanze mit erster Wurzel, ad Adventivsproß, h Pilzhyphen. Vergr. 15. B–D, F nach BRUCHMANN.
Sehr eigenartige und von den Marattiaceen abweichende Beschaffenheit zeigen die besonders durch BRUCHMANN bekannt gewordenen monözischen Prothallien, unterirdische, chlorophyllfreie, saprophytische, wie die Mykorrhizen gewisser Samenpflanzen von Pilzfäden durchzogene, langlebige Knöllchen, bei Ophioglossum (Fig. 469 F) zylindrisch einfach oder verzweigt und radiär gebaut, bei Botrychium oval oder herzförmig und dorsiventral (Fig. 469 B, C). Antheridien (Fig. 470) und Archegonien (Fig. 471) sind in das Gewebe eingesenkt; erstere umschließen einen großen Komplex von Samenzellen und öffnen sich bei der Reife dadurch, daß eine mittlere Deckzelle wohl infolge Verschleimung ihrer Wände abgeworfen wird. Das Spermium besteht aus einem schraubig gewundenen Körper mit anhaftendem Bläschen und zahlreichen Zilien (Fig. 470 E). Die Antheridien gehen aus oberflächlich gelegenen Zellen (Fig. 470 A–C) hervor, ebenso auch die Archegonien (Fig. 471 A–C), deren kurzer Halsteil sich etwas hervorstreckt und nach Verquellung der Halskanalzelle (hk) sich öffnet, während der Bauchteil eingesenkt bleibt und die Eizelle (o) umschließt. Der Embryo führt bei manchen Arten eine Reihe von Jahren hindurch ein unterirdisches Dasein; seine erste Wurzel wird zunächst angelegt und tritt bald aus dem Archegonium hervor (Fig. 469 C, F, k), während erst viel später das erste Blatt und die Scheitelzelle des Stammes zur Differenzierung kommen. Bei einigen Botrychium-Arten liefert die sich teilende Eizelle einen langen mehrzelligen Embryoträger oder Suspensor, an dessen Spitze erst der eigentliche Embryokörper gebildet wird. In dieser Eigentümlichkeit zeigt sich eine Übereinstimmung mit den Lycopodinen (vgl. Fig. 495 u. 500), die mit den Eusporangiaten im übrigen in keiner engeren Verwandtschaft stehen.
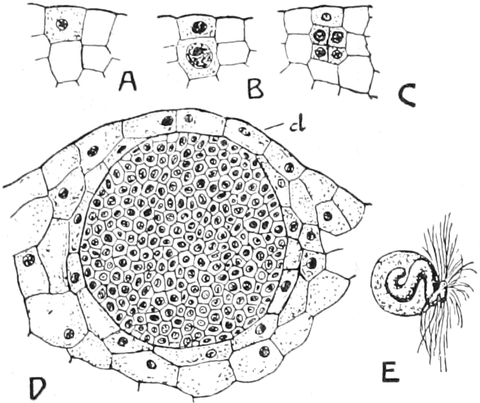
Fig. 470. Ophioglossum vulgatum. A–C Entwicklung des Antheridiums aus einer oberflächlichen Zelle, die obere Zelle in C liefert die Deckzellen, die untere die Spermienzellen. D Antheridium noch geschlossen, d Deckzellen. E Spermium. Nach BRUCHMANN.
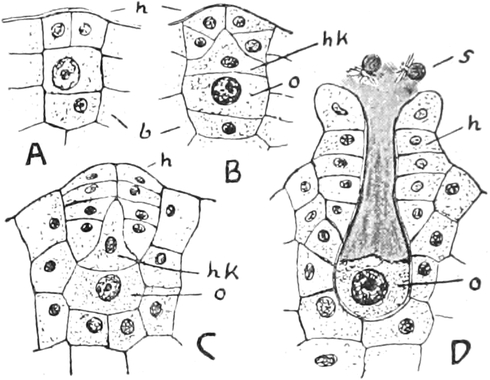
Fig. 471. Ophioglossum vulgatum. A–C Entwicklung des Archegoniums. D Reifes Archegonium geöffnet mit zwei Spermien s vor der Mündung. h Halszellen, hk Halskanalzellen, o Eizelle, b Basalzelle. Nach BRUCHMANN.
2. Unterklasse. Leptosporangiatae.
1. Ordnung. Filices.
Die Filices sind in außerordentlicher Fülle von Arten in allen Erdteilen verbreitet; ihre Hauptentwicklung erreichen sie in den Tropen. Hier treffen wir auch die stattlichsten Vertreter an, die Baumfarne (Cyathea, Alsophila, Dicksonia), welche die besondere Familie der Cyatheaceen bilden. Der holzige, meist etwa armdicke Stamm der Baumfarne (Fig. 472) ist unverzweigt und trägt an seinem Ende eine Rosette von sehr großen, mehrfach gefiederten Blättern oder Wedeln, die nach dem Absterben große Blattstielnarben hinterlassen. Der Stamm ist mittels zahlreicher Adventivwurzeln im Boden befestigt und ist auch von solchen dicht umhüllt. Die meisten Farne leben als krautartige bodenständige Pflanzen, besitzen ein wagerechtes oder aufsteigendes, wenig verzweigtes Rhizom und meist an seinem Ende eine Rosette reichgefiederter Blätter. So verhält sich u. a. der in Wäldern sehr häufige Wurmfarn Dryopteris (Aspidium) filix mas, dessen Rhizom als wurmtreibendes Mittel offizinell ist (Fig. 473). Bei dem gewöhnlichsten einheimischen Farnkraut, dem Engelsüß, Polypodium vulgare, sind die Blätter einfach gefiedert und entspringen einzeln auf der Oberseite des kriechenden, verzweigten Rhizoms. Auch gibt es manche Farne, welche ungeteilte Blätter aufweisen, so die Hirschzunge, Scolopendrium vulgare (Fig. 474). In den Tropen wachsen zahlreiche krautartige Farne als Epiphyten auf den Bäumen.
Wie Fig. 472 zeigt, sind die Blätter in der Knospe eingerollt, eine Eigentümlichkeit, die sämtlichen Farnen und auch den Wasserfarnen zukommt. Im Gegensatz zu der Mehrzahl der Phanerogamenblätter bleibt bei den Farnblättern der an ihrer Spitze befindliche Vegetationspunkt länger tätig.
Die meisten Farne sind an ihren Stämmen, Blattstielen und zum Teil auch den Blättern mit bräunlichen, einschichtigen, oft gefransten Spreuschuppen (Schuppenhaaren oder Paleae) bekleidet.
Die Sporangien werden in großer Zahl auf der Unterseite der Blätter erzeugt. Die Sporophylle sind in der Regel nicht von den sterilen Laubblättern in ihrer äußeren Form verschieden. Nur bei einigen Gattungen sind sie wesentlich anders gestaltet. Als einheimische Vertreter sind hier der Straußfarn, Struthiopteris germanica, ferner Blechnum spicant zu nennen, bei denen gedrungene, dunkelbraune Sporophylle zu mehreren im Innern der Rosette grüner Wedel stehen.
Im Bau der Sporangien zeigen die einzelnen Familien Unterschiede.
Es sei zunächst das Verhalten der Mehrzahl unserer einheimischen Farne dargestellt, die zu der umfangreichen Familie der Polypodiaceen gehören. Die Sporangien erscheinen hier in verschieden gestalteten Häufchen, sog. Sori, vereinigt. Sie entspringen auf einem hervortretenden Blattgewebepolster, dem Receptaculum (Fig. 473 A), und werden bei vielen Arten vor der Reife von einem häutigen Auswuchs der Blattfläche, dem sog. Schleier, Indusium, bedeckt und geschützt (Fig. 473 B, C). Das einzelne Sporangium (Fig. 475) geht aus einer einzigen Epidermiszelle durch Teilung hervor (Fig. 468), besteht im reifen Zustande aus einer kleinen Kapsel mit mehrzelligem, dünnem Stiel und mit einschichtiger Wandung und enthält eine größere Anzahl von Sporen, die nur bei einigen Gattungen (Asplenium, Aspidium, Acrostichum und Verwandte) ein sackartiges Perispor aufweisen. Sehr charakteristisch für die Polypodiaceen ist der Ring, Annulus, der über den Rücken und Scheitel des Sporangiums bis zur Mitte der Bauchseite als vortretende Zellenreihe mit stark verdickten Radial- und Innenwänden verläuft.
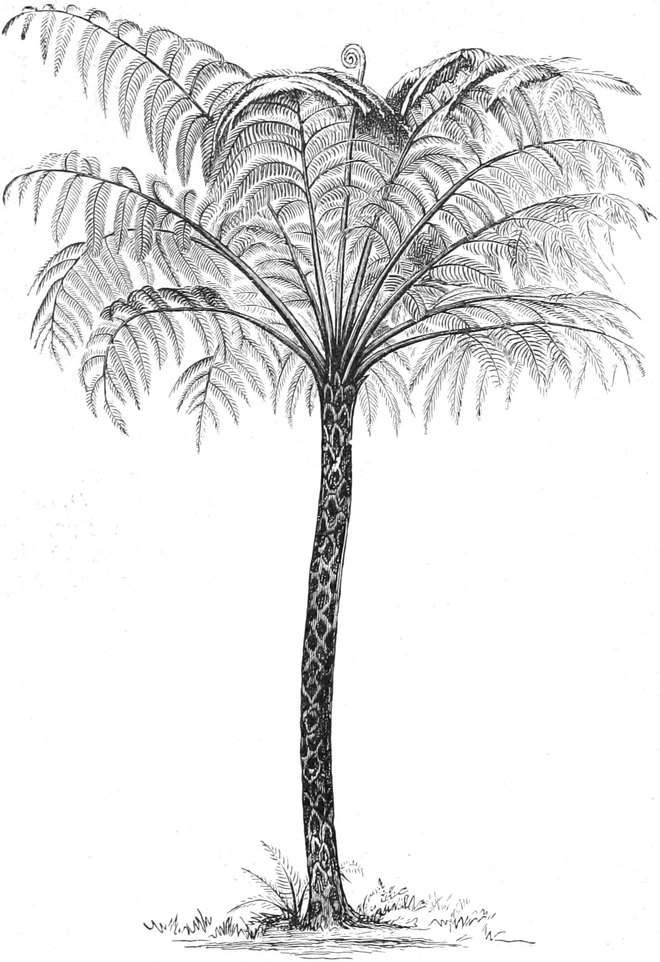
Fig. 472. Alsophila crinita, Baumfarn von Ceylon. Verkl.
Beim Austrocknen der Kapselwand werden durch den Kohäsionszug des schwindenden Wassers in den Annuluszellen die dünnen Außenwände nach innen eingestülpt, der Ring also an seiner Außenseite verkürzt und dadurch das Aufreißen der Sporangien in einer Querspalte zwischen den breiten Endzellen des Ringes verursacht. Ist der Kohäsionszug des Wasserrestes schließlich überwunden, so erfolgt ein elastisches, die Sporenausstreuung beförderndes Zurückschnellen des Ringes, worauf das Sporangium infolge Austrocknens und Kontraktion der dünnen Membranteile dauernd geöffnet bleibt (vgl. Fig. 277)[432].
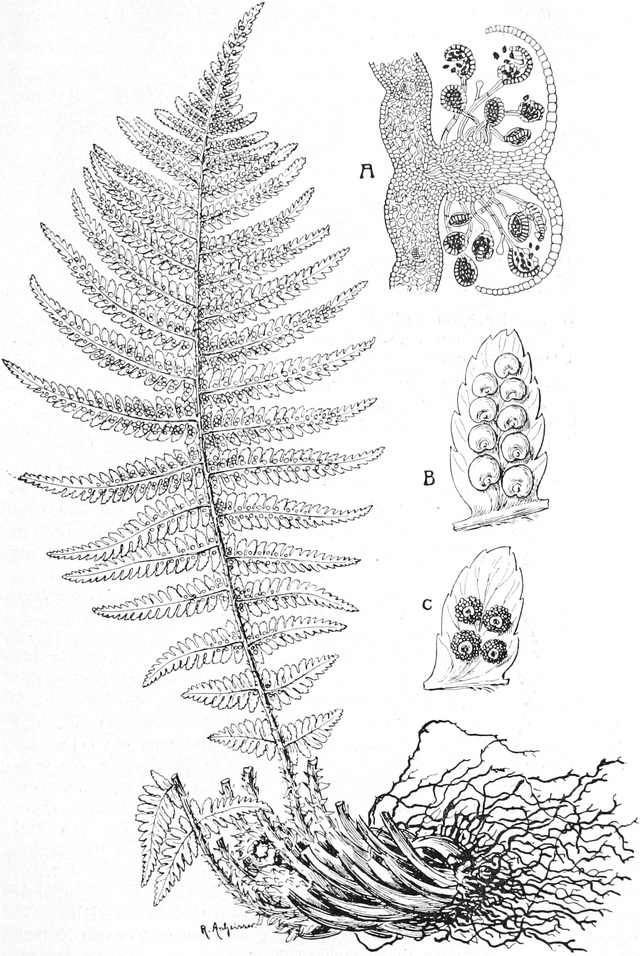
Fig. 473. Dryopteris (Aspidium) filix mas. 2⁄5 nat. Gr. A Sorus, quer durchschnitten. Vergr. 20. Nach KNY. B Fiederchen mit jungen, noch vom Schleier bedeckten Soris. C Desgleichen in älterem Stadium mit geschrumpftem Schleier. Schwach vergrößert. — Offizinell.
Fig. 474. Scolopendrium vulgare. 1⁄4 nat. Gr.
Die Form und Insertion der Sori, das Vorhandensein und die Gestalt oder das Fehlen der Indusien geben die wichtigsten Gattungsunterschiede ab. Bei Scolopendrium (Fig. 474) sind die Sori strichförmig, bestehen aus zwei parallel über je einen Blattnerven laufenden Streifen und werden an beiden Seiten von einem lippenförmigen, einschichtigen Indusium bedeckt, das bei der Reife zurückklappt. Bei Dryopteris (Aspidium) (Fig. 473) dagegen treffen wir zahlreiche rundliche Sori, bedeckt mit einem weißlichen, nierenförmigen, dem Receptaculumscheitel eingefügten Indusium, und die Sporangien tragen öfters an ihrem Stiel ein gestieltes, köpfchenförmiges Drüsenhaar. Bei Polypodium vulgare sind die rundlichen Sori ganz ohne Schleier. Bei dem Adlerfarn, Pteridium aquilinum, stehen die Sporangien an den Rändern der Blattfiedern in ununterbrochener Linie und werden von dem nach unten eingeschlagenen Blattrande bedeckt.
Fig. 475. Sporangien. A Von Dryopteris (Aspidium) Filix mas. Am Stiel ein Drüsenhaar. B und C von Alsophila armata, von zwei entgegengesetzten Seiten gesehen. D Von Aneimia caudata. E Von Osmunda regalis. A–D Vergr. 70, nach der Natur. E Vergr. 40. Nach LÜRSSEN.
Außer den Polypodiaceen umfassen die Farne noch andere, vorwiegend tropische Familien, deren Sporangien in der Ringbildung und dementsprechend auch im Öffnungsmechanismus Verschiedenheiten zeigen. So besitzen die Cyatheaceen oder Baumfarne Sporangien mit vollständigem, in schiefem Verlauf über den Scheitel ziehendem Ring (Fig. 475 B, C); die Hymenophyllaceen, die ausgezeichnet sind durch zierliche dünnhäutige Wedel von einfachster anatomischer Struktur und überwiegend als Epiphyten in tropischen Wäldern, in wenigen Vertretern auch noch im atlantischen Europa, Hymenophyllum tunbridgense sogar noch in Luxemburg und in der sächsischen Schweiz an feuchten Sandsteinfelsen, vorkommen, haben einen vollständigen, schief über das Sporangium laufenden Ring; die tropischen Schizaeaceen und Gleicheniaceen dagegen einen quer gestellten Ring, der bei ersteren nahe der Spitze (Fig. 475 D), bei letzteren etwa in der Mitte des Sporangiums verläuft, während die Osmundaceen, die bei uns durch den Königsfarn, Osmunda regalis, vertreten werden, auf dem Rücken unter dem Scheitel des Sporangiums nur eine kleine Gruppe dickwandiger Zellen aufweisen (Fig. 475 E). Bei den drei zuletzt genannten Familien öffnen sich die Sporangien mittels Längsspalte, bei den drei ersten Familien dagegen mittels quergestellter oder schiefer Spalte. So ergeben sich zwei Hauptgruppen, die longiciden und breviciden Leptosporangiaten, von denen erstere den Eusporangiaten näher stehen[433].
Alle Filices sind homospor. Ihr Prothallium hat meist die Gestalt eines flachen, herzförmigen, kleinen Thallus von der für Dryopteris in Fig. 463 dargestellten Form. Antheridien und Archegonien entstehen an der dem einfallenden Licht abgewandten Seite, normal also an der Unterseite.
Fig. 476. Trichomanes rigidum. Teil eines Prothalliums mit Archegonienträgern A, davon einer mit Keimpflanze. Nach GOEBEL.
Bei gewissen Hymenophyllaceen (Trichomanes) aber ist das Prothallium fädig verzweigt und trägt an seinen Ästen die Antheridien und auf besonderen mehrzelligen Seitenästen die Archegonien (Fig. 476). Im Aufbau erinnern diese Prothallien an das Protonema der Laubmoose.
Die Antheridien und Archegonien[434] zeigen denjenigen der Eusporangiaten gegenüber einige Unterschiede. Die Antheridien (Fig. 477) werden an jungen Prothallien angelegt und sind kugelig vorgewölbte Gebilde, die ohne Stiel mitten auf einer Prothalliumzelle sitzen und aus dieser durch papillenartige Vorwölbung, Abgrenzung durch eine Querwand und weitere Teilung hervorgegangen sind. Ihre Wand besteht aus zwei ringförmigen Zellen und einer Deckelzelle, die bei einigen Familien in zwei oder mehr Zellen sich teilt, bei den Polypodiaceen aber meist einfach bleibt. Die Spermienzellen gehen aus der zentralen Zelle durch Teilung hervor. Die Entleerung der Antheridien geschieht durch den Druck der schleimerfüllten und aufquellenden Ringzellen, welche die ebenfalls aufquellende Deckelzelle absprengen. So gelangen die rundlichen Spermienzellen ins Wasser und entlassen nach einiger Zeit je ein pfropfenzieherartig gewundenes, mit zahlreichen Zilien an den vorderen Windungen besetztes Spermium, an dessen Hinterende ein Bläschen befestigt ist, das einige kleine Körnchen enthält und einen unverbrauchten Rest des Inhaltes der Mutterzelle darstellt.