ERSTER TEIL Allgemeine Botanik. (continued 6)
Reading edition
Hat man durch systematisches Ausprobieren diejenige Konzentration des Plasmolytikums gefunden, die gerade die erste Abhebung des Protoplasmas an den Ecken der Zelle bewirkt, so kann man sagen, daß diese „plasmolytische Grenzkonzentration“ denselben osmotischen Wert besitzt wie der Zellsaft dieser entspannten Zelle. Wenn z. B. festgestellt ist, daß die Grenzkonzentration 0,2 Mol. Rohrzucker ist, so ist der Zellsaft isosmotisch mit 0,2 Mol. Rohrzucker, man sagt auch, der Zuckerwert des Zellsaftes beträgt 0,2 Mol. Da man nun in physikalischen Versuchen (z. B. mit Osmometern, doch auch mit anderen Methoden) den osmotischen Druck verschiedener Konzentrationen von Rohrzucker bestimmt hat[138], so weiß man, wie groß der osmotische Druck in einer solchen Zelle beim Eintauchen in Wasser werden kann. Wenn die Zellwand stark verdickt ist und dementsprechend so gut wie gar nicht dehnbar ist, dann kann auch der Zellsaft nicht durch eindringendes Wasser verdünnt werden, und eine solche Zelle kann den physikalisch ermittelten Wert als maximalen osmotischen Druck bekommen. Bei dehnbarer Membran aber tritt mit dem Wachsen des Zellvolumens bei der Wasseraufnahme stets eine Verdünnung des Zellsaftes ein. Nehmen wir an, die plasmolysierte Zelle dehne ihr Volumen bei Wasseraufnahme bis zur Sättigung auf das Doppelte aus, so wird also die Konzentration ihres Zellsaftes und damit ihr osmotischer Druck auf die Hälfte des Wertes sinken, den er bei fehlender Volumzunahme erreichen könnte. Nur bei sorgfältiger Berücksichtigung der Volumänderungen kann man also aus dem „Zuckerwert“ Schlüsse auf den tatsächlichen osmotischen Druck in einer Zelle machen. In den meisten Fällen ist der osmotische Wert nicht mit Zucker, sondern mit KNO3 bestimmt worden. In gewöhnlichen Zellen ist der Salpeterwert 0,15–0,30 Mol.; er kann aber auch auf 3 und mehr Mol. ansteigen. Im übrigen pflegt er selbst bei Nachbarzellen eines Gewebes um 0,1–0,2 Mol. zu differieren und je nach Außenbedingungen zum Teil periodisch zu schwanken[139].
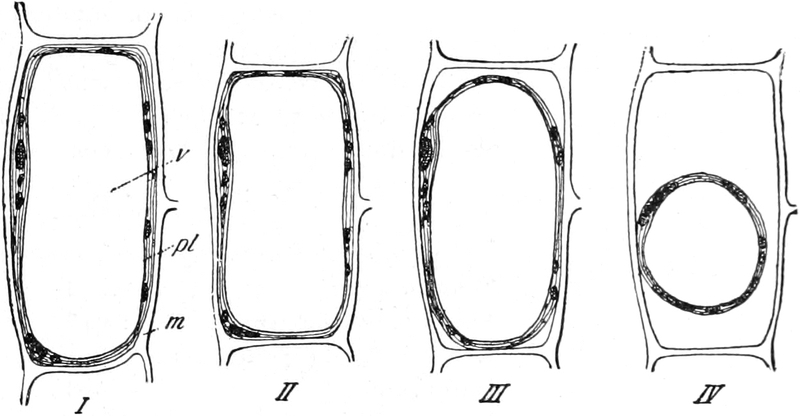
Fig. 236. Schema der Plasmolyse an einer jungen Zelle aus dem Rindenparenchym des Blütenstiels von Cephalaria leucantha (Compositae). m Zellhaut, pl Protoplasma, v Vakuole. I in Wasser. II in 4%iger Salpeterlösung. III in 6%iger Salpeterlösung. IV in 10%iger Salpeterlösung. Nach DE VRIES.
Die Ausdrücke osmotischer Druck, Turgordruck, Saugkraft werden in der Literatur vielfach in verschiedenem Sinn gebraucht. Sie sind hier durchweg im Anschluß an URSPRUNG[136], dessen Ausführungen uns klar und folgerichtig scheinen, gefaßt. Besonders betont sei noch, daß manche Chemiker von einem osmotischen Druck auch bei Lösungen sprechen, die nicht durch eine semipermeable Membran von Wasser getrennt sind, die also einen meßbaren Druck nicht erzeugen. Diese Ausdrucksweise will kaum etwas anderes bedeuten, als daß eben die Lösung den betreffenden osmotischen Druck erzeugen kann, wenn sie durch eine semipermeable Wand von Wasser getrennt ist.
Die Abhebung der Protoplasten von der Zellwand erfolgt nicht so glatt, wie die schematische Figur 236 das darstellt. In Wirklichkeit pflegt das Plasma durch feine Fäden mit der Haut verbunden zu bleiben; diese reißen später durch. Es ist wohl möglich, daß, wie HANSTEEN ausführt, das Protoplasma ursprünglich gar nicht scharf von der Zellhaut getrennt ist und daß die bei der Plasmolyse entstehende Oberfläche eine künstliche ist, die keineswegs dieselben Eigenschaften zu haben braucht wie die ursprüngliche Hautschicht.
Die Plasmolyse kann durch Überführung der Zelle in reines Wasser wieder rückgängig gemacht werden. Es tritt dann wieder die alte Turgeszenz ein. Tötet man aber das Protoplasma, so verliert es seine Semipermeabilität, und die Herstellung der Turgeszenz ist unmöglich. Besonders anschaulich tritt eine derartige Veränderung des Protoplasmas durch Abtöten bei Zellen mit gefärbtem Zellsaft (z. B. rote Rüben) vor Augen, weil hier dann sofort der Farbstoff in die Umgebung übertritt, während solche Zellen im lebenden Zustand tagelang im Wasser liegen können, ohne es zu färben.
Der Salpeterwert der Zelle ist zunächst einmal spezifisch verschieden. Besonders hohe Werte finden sich z. B. bei den Grasknoten (0,5–1,0 Mol.) und bei Wüstenpflanzen (3,0 Mol.). Die höchsten Werte aber treten in Pflanzen auf, die wie die Meeres- und Strandpflanzen in Salzlösungen oder wie viele Pilze in konzentrierten Zuckerlösungen gedeihen. In beiden Fällen muß, um eine Turgeszenz zu ermöglichen, der osmotische Wert des Zellsaftes den der Außenlösung übersteigen, und er paßt sich stets dem letzteren an; er ist nicht ein für allemal gegeben, sondern er ist regulationsfähig[140]. Man begreift, daß Zellen mit so hochkonzentriertem Zellsaft sofort platzen, wenn sie aus ihrer bisherigen Umgebung in reines Wasser oder in schwächere Lösungen überführt werden.
Außerdem ist aber der Salpeterwert auch bei den einzelnen Organen einer Pflanze verschieden. Das zeigt z. B. die folgende Tabelle (nach BLUM):
Fagus Mol. Urtica Mol.
Epidermis Blattunterseite 0,365 0,498
Schwammparenchym 0,571 0,635
Palisadenparenchym 1,017 1,015
Äußere Rinde (Stengel) 0,671 0,472
Kambium 0,634 0,548
Holzmarkstrahl 0,938 —
Wasseraufnahme vielzelliger Pflanzen. Bei vielen niederen Pflanzen beteiligen sich alle lebenden Zellen an der Wasseraufnahme; bei anderen komplizierteren dagegen grenzen nur die „Außenzellen“ an die wasserhaltige Umgebung an, und sie allein können demnach der Wasseraufnahme dienen. Beim Kormus ist die Wasseraufnahme — wenigstens bei den typischen „Landpflanzen“ — auf die Epidermiszellen der Wurzeln beschränkt. Die oberirdischen Teile sind schon durch die mehr oder minder stark entwickelte Kutikula ungeeignet für die Wasseraufnahme, so daß sie in der Natur nie so viel Wasser aufnehmen, als die Pflanze nötig hat. Die Wurzel dagegen ist durch ihre äußere Gestalt wie durch die feinere Struktur ihrer Oberhaut hervorragend zur Wasseraufnahme geeignet. Der Umstand, daß das Wasser im gewöhnlichen Boden in unsichtbar feiner Verteilung auftritt und von den Oberflächenkräften der Bodenpartikelchen festgehalten wird, macht eine große Oberfläche der aufnehmenden Wurzel notwendig. Eine solche wird einerseits durch eine reiche Verzweigung des Wurzelsystems, andererseits durch die Ausbildung von Wurzelhaaren hergestellt, die mit den kleinsten Bodenteilchen verwachsen (Fig. 237).
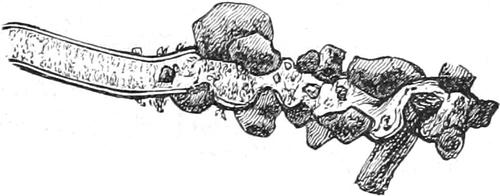
Fig. 237. Die Spitze eines Wurzelhaars mit Bodenteilchen verwachsen. Vergr. ca. 240. Nach NOLL.
Durch die zahllosen feinen Seitenwürzelchen und die aus ihnen entspringenden Wurzelhaare ist die Pflanze mit dem Boden verbunden und kann das kapillar in diesem festgehaltene Wasser aufnehmen, sobald sich in den Haaren durch Wasserverlust ein Saugvermögen eingestellt hat. Auch einem Boden, der sich schon trocken anfühlt, vermag die Pflanze noch Wasser zu entziehen. Bei dauernder Wasseraufnahme aus so trockenen Böden erfolgt schließlich Welken der Pflanze; aber auch in welkem Zustand geht die Wasseraufnahme noch fort, freilich nie so weit, daß auch die letzten Spuren dem Boden entzogen werden könnten. Weiter als unsere typischen Landpflanzen gehen nach FITTING die Wüstenpflanzen, weil ihre Zellsäfte ungewöhnlich hohe Konzentration besitzen und deshalb ein sehr starkes osmotisches Saugvermögen entwickeln können[141].
Es leuchtet ein, daß Zellen mit hohem Salpeterwert eine höhere Saugkraft entwickeln können als solche mit niedrigem Salpeterwert. Allein die Bestimmung des Salpeterwertes gibt kein Maß für die in der Zelle tatsächlich bestehende Saugkraft ab; diese hängt ja von der Wassersättigung ab.
Andere Arten der Wasseraufnahme. Manche Pflanzen nehmen das Wasser nicht aus dem Boden auf; sie gehören vor allem zu zwei ganz verschiedenen ökologischen Gruppen: zu den Epiphyten und zu den Wasserpflanzen. Über die morphologischen und anatomischen Eigentümlichkeiten, die eine Aufnahme von Regen oder Tau durch oberirdische Organe ermöglichen, ist schon S. 157 berichtet.
Bewegung des Wassers in der Pflanze.
Eine Bewegung des Wassers von der Wurzel nach den oberirdischen Teilen muß schon aus dem Grund erfolgen, weil Wasser zum Aufbau neuer Zellen in den wachsenden Teilen unentbehrlich ist. Tatsächlich braucht aber die Pflanze ungemein viel mehr Wasser, als das zu ihrem Aufbau nötige, weil sie große Wassermassen in Dampfform, geringere in tropfbar flüssiger Form an den oberirdischen Teilen abgibt. Der erste Vorgang ist unter dem Namen Transpiration, der zweite als Guttation bekannt.
Transpiration[142].
Wie jede freie Wasserfläche, wie jeder mit Wasser gequollene Körper, z. B. Gelatine, Leim, muß auch die Pflanzenzelle Wasser an die Luft abgeben, solange diese nicht völlig dunstgesättigt ist. Die Wasserabgabe ist bei manchen Pflanzenteilen (z. B. bei Wurzeln, bei submersen Teilen, bei Schattenpflanzen), wenn sie trockener Luft ausgesetzt werden, so groß, daß sie kollabieren, schlaff, welk werden und schließlich vertrocknen. Anders verhalten sich z. B. die Blätter unserer gewöhnlichen Landpflanzen. An ihnen ist zunächst nichts von Wasserabgabe zu bemerken. Doch auch sie welken, wenn es lange nicht regnet, wenn also die Wasseraufnahme aus dem Boden erschwert ist. Unterbindet man ihnen die Wasserzufuhr völlig, indem man sie abschneidet, so tritt das Welken schneller ein. Stellt man aber die abgeschnittenen Zweige in Wasser, so nehmen sie dieses mit der Schnittfläche auf und welken nicht. Daß sie für gewöhnlich an ihrem Standort nicht welken, beruht also offenbar darauf, daß Wasser in demselben Maß von unten her nachgeschoben wird, wie es oben verdunstet. Es läßt sich denn auch die Abgabe von Wasserdampf mit einfachen Mitteln nachweisen.
In sehr anschaulicher Weise wird die Transpiration durch Verfärbung von sog. Kobaltpapier demonstriert; Filtrierpapier, das mit einer Lösung von Kobaltchlorür getränkt ist, zeigt im Zustand völliger Trockenheit eine blaue Farbe; bei Wasserzutritt wird es rot. Legt man nun ein Stückchen blaues Kobaltpapier z. B. auf ein Blatt und bedeckt es zur Abhaltung der atmosphärischen Feuchtigkeit mit einer Glasplatte, so weist die beginnende Rotfärbung auf Transpiration hin, zugleich lassen sich aus der geringeren oder größeren Geschwindigkeit des Eintretens und Fortschreitens der Farbenänderung Schlüsse auf die Quantität des abgegebenen Wassers ziehen. Exakte Nachweise in dieser Hinsicht kann freilich nur die Wägung bringen. Sie muß an einer Pflanze ausgeführt werden, deren Blumentopf durch passende Umhüllung völlig an jeder Wasserabgabe verhindert ist. Es zeigt sich, daß die Wasserdampfabgabe der Pflanze in der Regel so groß ist, daß schon im Verlaufe einer Viertelstunde ein Gewichtsverlust eintritt, der beträchtlich genug ist, um ihn ohne jede Schwierigkeit auf einer gewöhnlichen Wage feststellen zu können. Über die Größe der Transpiration, die man zweckmäßigerweise auf die Einheit der transpirierenden Fläche beziehen wird, läßt sich nichts Allgemeines aussagen, da sie von vielen äußeren Umständen, z. B. von Temperatur, Licht, Wasserzufuhr usw., außerdem auch von der Struktur der Pflanze abhängt.
Der Vorgang der Transpiration vollzieht sich in folgender Weise. Eine der Luft exponierte Zelle muß von dem Quellungswasser ihrer Zellhaut dauernd Wasser an die Luft abgeben; dieser Prozeß würde bis zur Lufttrockenheit der Zellhaut weitergehen, wenn nicht von innen her Nachschub erfolgte. Ein solcher tritt nun aber in der Tat aus dem Protoplasma ein. Die nicht völlig gesättigte Zellhaut übt einen Zug auf das Wasser des Protoplasmas aus, und das Protoplasma sucht Deckung für den Verlust aus dem Saftraum. So pflanzt sich also die Wasserbewegung bis ins Zellinnere fort und bewirkt eine Verringerung des Turgordruckes. Damit ist dann eine Saugkraft in dieser Zelle hergestellt und die Bedingung zur Wasseraufnahme aus einer Nachbarzelle gegeben, die selbst nicht transpiriert; und so setzt sich die Wasserabgabe von der verdunstenden Oberflächenzelle in die Tiefe der Gewebe fort. Die Größe der Transpiration hängt vor allem davon ab, wie groß die Wasserdurchlässigkeit der Zellhaut ist. Handelt es sich um eine gewöhnliche Zellulosewand, so ist die Transpiration demnach groß; ist aber die Zellwand mit Wachs und Kutikula bedeckt oder mit Kutikularsubstanz imprägniert, so gibt sie wenig Wasser ab. Vergleichende Versuche mit Kobaltpapier lassen dementsprechend an geeigneten Objekten leicht erkennen, wie die Transpiration mit der Zunahme der Dicke der Kutikularschichten abnimmt, bis sie schließlich so gut wie ganz verschwindet. Ähnlich wie Kutikularschichten wirken Korkhäute. Jedermann weiß, wie lange Zeit Äpfel oder Kürbisse, d. h. Früchte mit wohl ausgebildeter Kutikula, oder Kartoffelknollen, die mit einer Korkhaut versehen sind, ohne Wasseraufnahme turgeszent bleiben. Wenn aber die Laubblätter im allgemeinen derartige Schutzmittel gegen Transpiration nicht in dem Maße besitzen, so ist das kein Nachteil für die Pflanze; denn die Transpiration ist nicht etwa ein Übel, sondern sie ist nötig, einerseits weil sie die Temperatur der Pflanze herabsetzt, die in der prallen Sonne leicht lebensgefährlich hoch werden könnte, andererseits weil sie eine rasche Bewegung der sehr verdünnten Nährsalze bewirkt und endlich weil sie diese verdünnten Lösungen eindickt. So haben wir denn auch Einrichtungen kennen gelernt (S. 144), die man als Förderungsmittel für die Transpiration bezeichnen kann. Dahin gehört vor allem die große Flächenausdehnung der Blätter.
Nun ist aber die Transpiration nicht auf unmittelbar an die Luft grenzende Zellen beschränkt; auch zahllose Binnenzellen können Wasserdampf abgeben, wenn sie an Interzellularräume angrenzen. Die lufterfüllten Interzellularen müßten freilich nach kurzer Zeit völlig wasserdampfgesättigt sein, wenn sie ringsum abgeschlossen wären. In Wirklichkeit aber finden sich, wie wir gesehen haben, Kommunikationswege zwischen der Atmosphäre und den Interzellularen, von denen die wichtigsten die Spaltöffnungen (S. 43) sind. Aus ihnen kann der Wasserdampf austreten, und so wird erzielt, daß die Wasserdampfsättigung der Interzellularenluft keine vollständige ist. Den aus den Spaltöffnungen austretenden Wasserdampf kann man leicht mit Kobaltpapier nachweisen. Legt man dieses gleichzeitig auf Ober- und Unterseite eines Blattes, das nur auf der Unterseite Spaltöffnungen führt, so zeigt sich, daß hier rasche Farbenänderung eintritt, während an der Oberseite die blaue Farbe lange Zeit erhalten bleibt.
Diese Ausführungen zeigen, daß man zwischen kutikulärer und stomatärer Transpiration unterscheiden kann. Bei der typischen Landpflanze spielt zweifellos die stomatäre Transpiration die Hauptrolle; bei Pflanzen, die feuchte Lokalitäten bewohnen, nimmt aber auch die kutikuläre Transpiration beträchtliche Dimensionen an. Die Spaltöffnungen sind zwar außerordentlich feine Poren in der Epidermis — vgl. S. 43 —, aber sie sind in sehr großer Zahl vorhanden und zudem außerordentlich zweckmäßig angeordnet. NOLL hat berechnet, daß ein einziges mittelgroßes Kohlblatt mit etwa 11 Millionen, ein Blatt der Sonnenblume mit etwa 13 Millionen Luftspalten versehen ist. Die Transpiration erfolgt also durch zahllose, zwar sehr enge, aber sehr dicht stehende Öffnungen in der Kutikula, die selbst so gut wie kein Wasser durchläßt. BROWN und ESCOMBE aber haben gezeigt, daß durch eine solche siebartig durchlöcherte Membran, die über den transpirierenden Mesophyllzellen ausgespannt ist, unter Umständen ebensoviel Wasser diffundieren kann, wie wenn die Mesophyllzellen frei der Luft exponiert wären. Wenn das richtig ist, muß man fragen, warum denn die Pflanze überhaupt einen derartig komplizierten Apparat aufbaut und nicht die freie Transpiration aus ungeschützten Zellen vorzieht. Der Grund liegt darin, daß die Spaltöffnungen nicht nur die Transpiration fördern, sondern auch ganz aufheben können, daß sie die Transpiration regulieren, was einer Kutikula nicht möglich ist. Die Weite der eigentlichen Spalte kann nämlich durch Vorgänge in den Schließzellen verändert werden; ist die Spalte geschlossen, so ist die Transpiration fast Null, ist die Spalte weit geöffnet, so erfolgt maximale Transpiration. Da nun Öffnen und Schließen der Spalten nach Bedürfnis der Pflanzen erfolgt, so haben wir es in den Spaltöffnungen mit Organen zu tun, die in wunderbar zweckmäßiger Weise reagieren. Die Öffnung der Spalten wird vielfach durch Beleuchtung und durch einen gewissen Feuchtigkeitsgrad der Luft verursacht; umgekehrt wirken Verdunklung oder trockene Luft auf ein Schließen der Spalten hin.
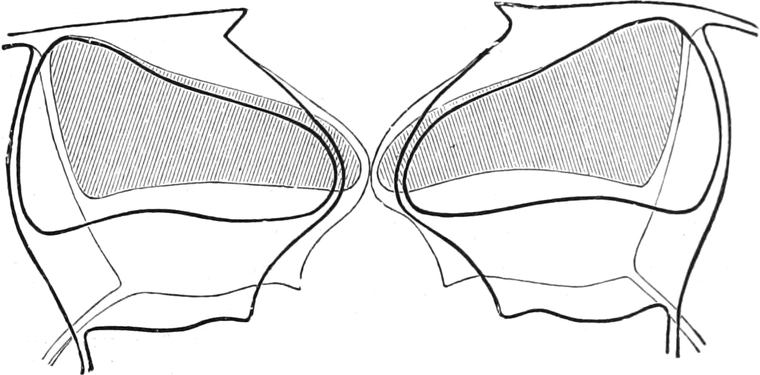
Fig. 238. Spaltöffnung von Helleborus spec. im Querschnitt. Die dicken Linien zeigen die Form der Schließzellen bei geöffnetem Spalt, die feineren Linien bei geschlossenem Spalt. Nach SCHWENDENER. Der Saftraum der Zellen im geschlossenen Zustand wurde hier schraffiert; er ist sichtlich kleiner als bei geöffneten Schließzellen.
Die Bewegungen der Schließzellen sind Reizbewegungen und erfolgen durch Turgordruck. Vermöge der eigenartigen Verdickungen der elastischen Zellwände der Schließzellen (S. 45) führen Druckschwankungen in ihnen nämlich zu Gestaltsveränderungen, derart, daß eine Steigerung des Turgordruckes die Krümmung der Zellen vermehrt, eine Abnahme sie vermindert. Der erste Vorgang hat demgemäß das Öffnen, der zweite den Verschluß der Spalten zur Folge, wie das aus der Abbildung Fig. 238 ohne weiteres hervorgeht (vgl. auch Fig. 47–49).
Eine Zunahme des Turgordruckes könnte schon dadurch zustande kommen, daß der osmotisch wirksame Inhalt der Schließzellen mehr Wasser aufzunehmen in die Lage käme; tatsächlich erfolgt er aber dadurch, daß bei Zunahme der Beleuchtung und der Luftfeuchtigkeit der osmotische Wert der Schließzellen ganz beträchtlich zunimmt. Dieser Wert nimmt umgekehrt bei Verdunklung und Trockenheit ab.
Der maximale osmotische Wert der Schließzellen kann auf 1 Mol., ja selbst auf 2 Mol. NaCl steigen gegenüber 0,15 Mol. der gewöhnlichen Epidermiszellen. Bei Wasserentziehung (durch Austrocknung oder Zuckerlösung) oder durch Verdunklung sinkt der osmotische Wert der Schließzellen unter Umständen noch unter den der Epidermiszellen[143].
Die Spaltöffnungen sind vorzugsweise auf den Blattflächen zu finden, die Blätter sind demnach als Organe der Transpiration (und Assimilation S. 215) zu betrachten. Die Leistungen der Blätter im Verdunsten von Wasser sind denn auch außerordentlich überraschend[144]. Eine kräftige Pflanze, beispielsweise eine Sonnenblume von Manneshöhe, verdunstet an einem hellen Tage über ein Liter Wasser, und man hat festgestellt, daß ein Morgen mit Kohlpflanzen in 4 Monaten zwei Millionen Liter, ein solcher mit Hopfen 3–4 Millionen Liter Wasser verdunstet. Für eine einzeln stehende Birke mit etwa 200000 Blättern berechnete VON HÖHNEL das verdunstete Wasser an einem heißen, trockenen Tage auf etwa 300–400 Liter, im Tagesdurchschnitt auf 60–70 Liter. Ein Hektar Buchenhochwald verdunstet im Durchschnitt 20000 Liter täglich. Auf je 100 g Blattsubstanz berechnet, verbraucht in einer Vegetationsperiode die Rotbuche 75 Liter, die Tanne aber nur 7 Liter. Im Durchschnitt verdunstet eine Pflanze für jedes Gramm Trockensubstanz, das sie in ihren oberirdischen Teilen bildet, 250–900 g Wasser.
Die Flächenentwicklung und die feinere Organisation des Blattes (Zahl und Weite der Spaltöffnungen, Ausbildung von Kutikula und Behaarung) beeinflussen die Wasserabgabe außerordentlich stark; deshalb versteht man es, daß verschiedene Pflanzen sehr ungleich stark transpirieren. Aber auch ein und derselbe Sproß transpiriert nicht immer gleichmäßig; das kommt daher, daß äußere und innere Ursachen einerseits physiologische Folgen haben, indem sie die Weite der Spaltöffnungen verändern, und daß sie andererseits die Transpiration auch rein physikalisch ebenso beeinflussen wie die Verdunstung eines freien Wasserspiegels. Wärme, Trockenheit und Bewegung der Luft steigern die Verdunstung physikalisch, während Beleuchtung und Feuchtigkeit sie physiologisch fördern. Beide Momente wirken zusammen dahin, daß am Tage die Verdunstung im allgemeinen stärker ist als des Nachts. Pflanzen, die, wie Impatiens parviflora, an heißen trockenen Tagen leicht welken, werden daher nachts wieder frisch.
Vergleicht man die Transpiration eines Blattes mit der Evaporation einer gleichen Fläche reinen Wassers, die unter gleichen Außenverhältnissen steht wie das Blatt, so gibt das Verhältnis Transpiration : Evaporation, das immer kleiner als 1 ist und als relative Transpiration[145] bezeichnet wird, ein Maß für die physiologisch wirksamen Momente im Blatt, vor allem also für die regulierende Tätigkeit der Stomata.
Dieser Begriff muß indes noch mit Vorsicht verwendet werden, denn SIERP hat gezeigt, daß bei steigender Windgeschwindigkeit die Evaporation der freien Wasserfläche ganz anderen Gesetzmäßigkeiten folgt als die Wasserabgabe durch multiperforate Membranen, die relative Transpiration also bei verschiedenen Außenbedingungen auch ohne organische Regulationen ganz ungleiche Werte haben kann. Der Einfluß des Windes, der in den Studien von BROWN und ESCOMBE ganz zurücktrat, ist erst neuerdings voll gewürdigt worden; er ist um so wichtiger, als die Luft in der Natur niemals so unbewegt ist, daß eine Diffusion aus einem Blatt in der Weise vor sich geht, wie BROWN und ESCOMBE das annahmen. — Während bei ganz ruhiger Luft auch die Gestalt des Blattes und die Gestalt der ganzen Pflanze für die Größe der Transpiration von Bedeutung sein könnten, ist bei bewegter Luft stets nur die transpirierende Fläche wirksam (SIERP).
Über die Öffnungsweite[146] der Spaltöffnungen orientiert man sich durch direkte Beobachtung mit dem Mikroskop, Anwendung von Kobaltpapier (S. 195) oder durch die „Infiltrationsmethode“: sind die Stomata geöffnet, so dringen Flüssigkeiten wie Petroleum, Alkohol usw. leicht ein und injizieren das ganze Interzellularensystem, das Blatt wird also durchsichtig. Legt man quer über ein Blatt einen Streifen schwarzen Papiers, so schließen sich unter diesem die Spaltöffnungen. Nach Behandlung mit Alkohol ergibt sich das Bild der Fig. 239. Sehr anschaulich wird das Offensein der Spaltöffnungen auch mit der „Gasdiffusionsmethode“ demonstriert. Werden z. B. rote, anthozyanhaltige Blätter mit offenen Spalten in ammoniakhaltige Luft gebracht, so tritt in wenigen Sekunden eine Blaufärbung ein, die bei geschlossenen Spalten ausbleibt. In neuester Zeit ist ganz besonders das von DARWIN zuerst konstruierte Porometer ausgiebig zu Messungen über die Öffnungsweite der Stomata benutzt worden. Es besteht aus einer kleinen Glasglocke (Fig. 240 G), die mit Leim einem Blatt (B) aufgedichtet wird. Die Luft im Innern wird durch Saugen bei Q etwas unter Atmosphärendruck gebracht; ihr Druck kann an einem Wassermanometer abgelesen werden. Die Geschwindigkeit des Ausgleiches zwischen dem Atmosphärendruck und dem Druck in der Glocke gibt ein Maß für den Öffnungszustand der Spaltöffnungen.
Daß die Spaltöffnungen vortrefflich regulatorisch wirken, kann man daraus entnehmen, daß in unserem Klima die Schwankungen im Wassergehalt eines Blattes nur etwa 1% betragen[147]. Ein so geringfügiger Wasserverlust führt freilich schon zum Welken.
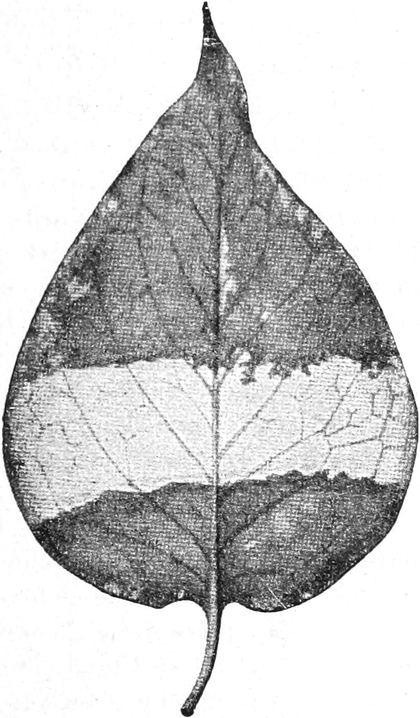
Fig. 239. Ein Blatt der Syringe wird in der Mitte verdunkelt, an den Enden dem Licht exponiert. Nur die beleuchteten Spaltöffnungen bleiben offen und lassen absoluten Alkohol eindringen. Nach MOLISCH.
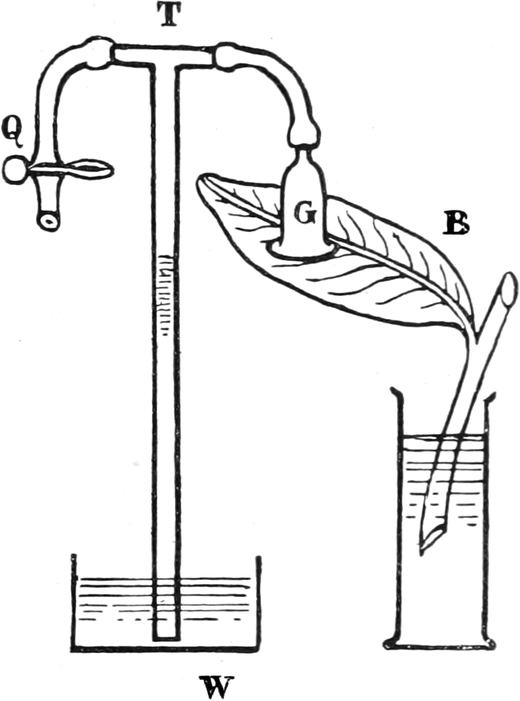
Fig. 240. Porometer nach DARWIN. B Blatt, G Glasglocke, T Manometer, Q Quetschhahn, W Wasser.
Erst nach Eintritt des Welkens schließen sich die Stomata; eine ganz ideale Regulation vermögen sie also nicht auszuüben. Es konnte mehrfach gezeigt werden[148], daß dem Spaltenverschluß bei starker Transpiration zunächst eine ganz unzweckmäßige Erweiterung der Spalten vorausgeht, die ihrerseits das Welken beschleunigt. Wie alle Regulation hinkt also auch die der Stomata etwas nach. — Nach den Angaben einiger Autoren[149] sieht es so aus, als ob außer den Spaltöffnungen noch ein anderer Faktor die Transpiration herabzusetzen vermöchte. Abgeschlossene Resultate liegen noch nicht vor.
Pflanzen trockener Standorte, die mit dem aufgenommenen Wasser haushälterischer verfahren müssen als die typische Landpflanze, zeigen eine Fülle von Einrichtungen, die sie vor übermäßiger Transpiration schützen (vgl. S. 144), können andererseits auch einen viel größeren Wasserverlust ohne Schaden ertragen als unsere einheimische Flora (LIVINGSTON). Umgekehrt finden sich bei Pflanzen sehr feuchter Lokalitäten Einrichtungen zur Förderung der Transpiration. Gelingt es dem Blatt durch Wärmeabsorption von außen her oder durch Wärmeproduktion aus eigenen Mitteln (S. 241) seine Temperatur über die der Umgebung zu heben, so ist selbst in dunstgesättigter Luft noch eine Transpiration möglich. In der Guttation liegt endlich ein Mittel der Pflanze vor, auch nach völligem Aufhören der Transpiration noch Wasser abzugeben.
Guttation[150].
Die Ausscheidung tropfbar flüssigen Wassers aus unverletzten Pflanzen ist ungleich seltener wahrzunehmen als die Transpiration, denn sie findet nur unter engbegrenzten Bedingungen statt, nämlich dann, wenn die Pflanze wassergesättigt, die Luft dunstgesättigt ist. In der Natur bemerkt man sie dementsprechend bei uns nur am frühesten Morgen nach einer regenlosen, aber feuchtwarmen Nacht. Man sieht da an den Blatträndern und Spitzen mancher Pflanzen glitzernde Wassertropfen ansitzen, die langsam an Größe zunehmen, abfallen und durch neue Tröpfchen ersetzt werden. Es handelt sich aber nicht etwa um Taubildung, sondern um Tropfen, die von den Blättern selbst ausgeschieden werden. Mit der Zunahme der Temperatur verschwinden sie dann, weil die Pflanze nicht mehr voll wassergesättigt ist. Erhöht man aber den Wassergehalt der Pflanze, entweder indem man ihre Verdunstung herabsetzt (z. B. durch Überstülpen einer Glasglocke), oder indem man Wasser künstlich in abgeschnittene Zweige einpreßt, so tritt die Tropfenausscheidung alsbald wieder auf.
Die Tropfen treten bei den Gräsern an der Blattspitze, bei Alchimilla an den Blattzähnen, bei Tropaeolum (Fig. 241) an den stumpfen Ausbuchtungen des Blattes auf; sie kommen entweder aus sog. Wasserspalten (S. 99) oder aus gewöhnlichen Spaltöffnungen, oder sie werden von Apikalöffnungen oder von Haaren (manchmal auch von Brennhaaren) sezerniert. Alle solche wasserausscheidenden Organe nennt man Hydathoden.
Ungleich verbreiteter als in unserem Klima findet sich die Wasserausscheidung im feuchten, tropischen Urwald. Besonders auffallend ist sie bei manchen großblätterigen Araceen, an deren Blattspitzen das Wasser oft in kurzen Zwischenräumen abtropft. Bei Colocasia nymphaeifolia kann es sogar auf kurze Strecken fortgeschleudert werden; dabei scheidet ein einziges Blatt zuweilen 190 Tropfen in der Minute, in einer Nacht oft 1⁄10 Liter aus. — Auch an einzelligen Pflanzen, so an Schimmelpilzen, ist oft eine reichliche Ausscheidung von Wassertröpfchen durch die Zellwand und die Kutikula hindurch wahrzunehmen, die hier, wie auch bei Wasserpflanzen, durchlässig ist.
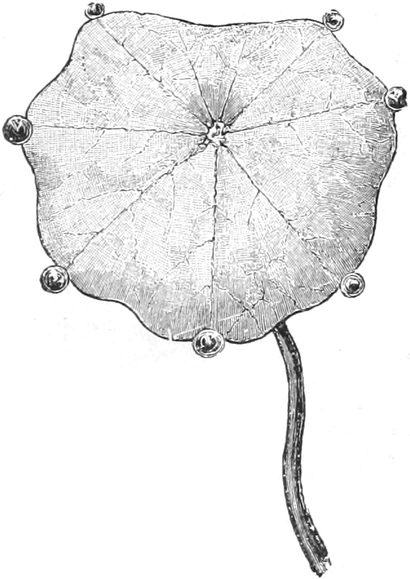
Fig. 241. Ausscheidung von Wassertropfen aus einem Blatte der Kapuzinerkresse (Tropaeolum majus). Nach NOLL.
Die Ausscheidung flüssigen Wassers kann unter ungünstigen Transpirationsbedingungen, vor allem bei submersen Wasserpflanzen, die Verdunstung in gewissem Sinne vertreten oder ersetzen. Ihre Bedeutung für die Pflanze deckt sich aber insofern nicht mit der Transpiration, als in den Tropfen sehr häufig mineralische oder organische Substanzen mit ausgeschieden werden. Diese Stoffe sind manchmal so reichlich im ausgestoßenen Wasser enthalten, daß sie nach dessen Verdunstung als kleine Krusten zurückbleiben. Auf diese Weise entstehen die Kalkschüppchen der Steinbrecharten, die Salzmassen mancher Halophyten (S. 206). STAHL hat wahrscheinlich gemacht, daß in der Ausscheidung solcher gelöster Salze (Exkretion) die physiologische Hauptrolle der Guttation liegen kann, da manche derartige Stoffe, wenn sie sich in den Zellen anhäufen, schädlich wirken. Daß bei den Aussonderungen der Nektarien, bei den Verdauungsdrüsen der Insektivoren (S. 222) und bei den Ausscheidungen mancher Narben nicht das Wasser, sondern der gelöste Körper das wichtigste ist, versteht sich von selbst. Bei manchen Nektarien ist die Ausscheidung weitgehend unabhängig vom Wassergehalt und kann auch noch an der welkenden Pflanze weiter gehen.
Bluten. Einen Wasseraustritt aus der Pflanze kann man vielfach nach Verwundungen beobachten; regelmäßig sieht man ihn an beschnittenen Bäumen und Sträuchern im Frühjahr, z. B. besonders stark an der Rebe. Auch an Stauden, die man dicht über der Erde abgeschnitten hat, läßt sich leicht ein Wasseraustritt aus der Wunde zeigen. Man spricht vom Tränen oder Bluten der Wunden und stellt leicht fest, daß das Wasser aus den Gefäßen hervorquillt und daß es auch gegen hohen Widerstand ausgepreßt wird (Blutungsdruck).
Die Figur 242 zeigt, in welcher Weise man den Blutungsdruck, den ein Stammstumpf s produziert, mit Hilfe eines Manometers messen kann. Die Quecksilbersäule wird bei gewissen Pflanzen bis zu 50 und 60, unter günstigen Bedingungen aber bis zu 140 Zentimeter (Birke) oder noch höher emporgedrückt. Diese Druckkräfte könnten also eine Wassersäule bis zu 6, 8 und 18 Metern halten.
Besonders reichlich ist der Wasseraustritt, wenn die Erde feucht und warm ist; er dauert dann je nach der Pflanze und ihrem Entwicklungszustand oft mehrere Tage bis Monate an, und das ausgeschiedene Wasser beträgt unter Umständen bis zu einigen Litern und mehr; bis zu 1 Liter am Tag bei der Rebe, bis 5 Liter bei der Birke, 10 bis 15 Liter bei Palmen. Bei längere Zeit hindurch blutenden Pflanzenteilen bemerkt man eine gewisse Periodizität der Blutungsmenge; nachts wird mehr ausgeschieden als am Tag.
Der „Blutungssaft“ führt außer mineralischen Salzen zuweilen erhebliche Mengen von organischen Substanzen (gelöste Eiweißstoffe, Asparagin, Säuren, besonders aber Kohlehydrate) mit sich; bei einigen Pflanzen ist der Zuckergehalt dieses Saftes so groß, daß Zucker technisch daraus gewonnen werden kann. So liefert der Zuckerahorn Nordamerikas mit 1⁄2% Zucker im Saft in einem Frühjahr etwa 2–3 Kilo von einem Baum. Solcher Saft kann auch gleich Most oder Biermaische zu berauschenden Getränken vergoren werden und liefert dann Birkenwein, Palmwein oder die „Pulque“ der Mexikaner. Diese wird aus dem Safte blühreifer Agaven gewonnen; eine einzelne Pflanze kann in 4–5 Monaten nahezu 1000 Liter Saft ausscheiden.
Ursachen der Wasserausscheidung[151]. Bei der Tropfenausscheidung an der intakten Pflanze handelt es sich nur zum Teil um Wasserausscheidung aus Oberflächenzellen. In anderen Fällen wird Wasser in die Gefäße eingepreßt und tritt dann an Orten geringeren Widerstandes zutage (S. 99). Auch bei den Erscheinungen des Blutens wird Wasser aus Parenchymzellen in die Hohlräume der Gefäße gedrückt, und wenn das auch ganz besonders häufig in der Wurzel stattfindet, so fehlt der Vorgang doch in den Stengeln und Blättern durchaus nicht.
Allen geschilderten Vorkommnissen gemeinsam ist also in letzter Linie eine einseitige Flüssigkeitsausscheidung aus lebenden Zellen. Auf die Ursachen einer solchen Drüsentätigkeit der Zellen kann hier nicht eingegangen werden.
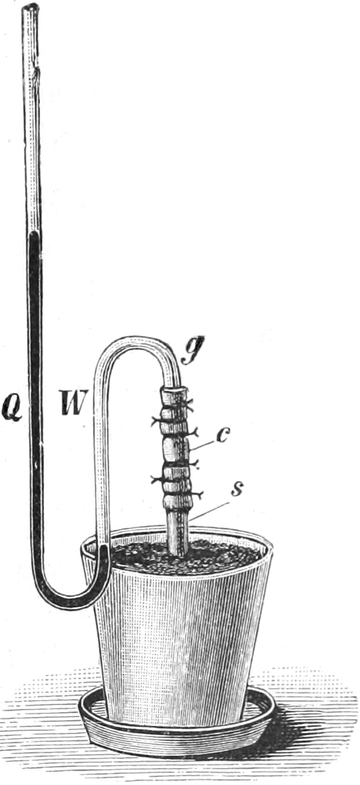
Fig. 242. Demonstration des Wurzeldruckes an einer Georgine. Auf den glatt abgeschnittenen Stumpf s ist mittels Kautschukschlauchs c das gebogene Glasrohr g aufgesetzt. Das aus der Erde durch die Wurzel aufgenommene Wasser W wird so kräftig ausgepreßt, daß es den Druck der Quecksilbersäule Q überwindet. Nach NOLL.
Leitung des Wassers[152].
Das Wasser, das teils in Dampfform namentlich von den Blättern abgegeben wird, teils durch Hydathoden oder Wunden in flüssiger Form der Pflanze entströmt, ist im allgemeinen von der Wurzel aufgenommen worden. Es hat also einen Weg zurückzulegen, der schon bei einjährigen Pflanzen nach Metern messen kann, bei den Riesen des Pflanzenreiches aber etwa 100 m beträgt (Eucalyptus amygdalina 110 m; Sequoia gigantea 95 m Stammhöhe). Durch osmotische Saugung von Zelle zu Zelle würde diese Wasserbewegung viel zu langsam stattfinden, um die Verluste decken zu können. Tatsächlich erfolgt denn auch die Strömung des Wassers zur Deckung der Transpiration, der sog. Transpirationsstrom, im Gefäßteil der Leitbündel bzw. bei Bäumen im Holzkörper. Das kann man schon aus einem uralten Versuch, dem sog. Ringelungsversuch, entnehmen. Werden an einem Aste eines Baumes eine Strecke weit die Gewebe bis auf den Holzkörper fortgenommen, so bleiben zunächst, d. h. solange nicht eine Austrocknung oder Zersetzung des Holzkörpers an der entrindeten Stelle eingetreten ist, die Blätter dieses Astes ebenso frisch wie die eines anderen, nicht geringelten Astes; das beweist, daß der Transpirationsstrom nicht durch die Rinde, sondern durch den Holzkörper sich bewegt. Entfernt man dagegen aus einem Zweige sorgfältig eine Strecke weit den Holzkörper und läßt die Rinde größtenteils im Zusammenhang, so welken die Blätter über der Operationsstelle so rasch wie an einem völlig abgeschnittenen Zweige. Man kann diese Versuche ebensogut an intakten Pflanzen ausführen wie an abgeschnittenen, in Wasser gestellten Zweigen; denn letztere nehmen wenigstens eine Zeitlang (solange keine sekundären Änderungen an der Schnittfläche eingetreten sind) das Wasser ebenso lebhaft direkt mit dem Holzkörper auf wie intakte Pflanzen mit der Wurzel. Wird ein abgeschnittener Zweig mit seiner Schnittfläche in eine Lösung von Gelatine gestellt, und läßt man dann die Gelatine, die eine Strecke weit in die Gefäße eingedrungen ist, erstarren, so hat der Holzkörper seine Leitfähigkeit für Wasser verloren. Man sieht daraus, daß das Lumen der Gefäße für die Leitung des Wassers unentbehrlich ist. Aber freilich, in der lebenden Pflanze sind die Gefäße nicht nur mit Wasser gefüllt, sondern sie führen wenigstens in Zeiten lebhafter Transpiration immer auch Luft.
Entsprechend ihrer Aufgabe findet man die Gefäßteile in Wasserpflanzen und Sukkulenten, in denen gar keine oder eine sehr schwache Transpiration besteht, nur spärlich entwickelt. Dagegen besitzen die transpirierenden Blattflächen ein außerordentlich reiches Leitbündelgewebe, das zudem durch vielfache Anastomosen dafür sorgt, daß jeder beliebige Punkt auch bei Nichtfunktionieren des nächsten Verbindungsstranges doch genügend Wasser enthält. Die Fig. 128 gibt von diesem Berieselungssystem eines Blattes noch keine vollständige Vorstellung, denn die feinen, nur mikroskopisch nachweisbaren Stränge sind in ihr gar nicht dargestellt. Auch in den Zuleitungen zu den Blättern, in den Stämmen, findet man, insbesondere bei den in die Dicke wachsenden Bäumen, ein außerordentlich leistungsfähiges Wasserleitungssystem. Es ist freilich nicht mehr das gesamte Holz eines dicken Stammes, welches der Wasserleitung dient; sie ist vielmehr stets auf die jüngsten Jahresringe beschränkt. Wo Kernholz (S. 135) gebildet wird, ist dieses von der Leitung völlig ausgeschlossen.
Über die bewegenden Kräfte des Transpirationsstromes ist man noch nicht im klaren. Man wird in erster Linie an eine Druckwirkung von unten oder eine Saugwirkung von oben her denken und für erstere den Blutungsdruck, für letztere den Vorgang der Transpiration verantwortlich machen. Allein der Blutungsdruck kommt aus mehreren Gründen nicht in Betracht, und ob die Saugkraft der Transpiration ausreicht, um Wasser bis zum Gipfel hoher Bäume dauernd in ausreichender Menge zu heben, erscheint zweifelhaft. Eine allseitig anerkannte Lösung des vielumstrittenen Problems existiert demnach heute nicht.
Bezüglich des Blutungsdruckes der Wurzel (Wurzeldruck) ist folgendes zu bedenken: Bei vielen Pflanzen erreicht der Wurzeldruck nur sehr geringe Höhe oder fehlt ganz. Aber auch bei Pflanzen mit kräftigem Wurzeldruck ist die von der Wurzel gelieferte Wassermenge erheblich geringer als die bei der Transpiration verbrauchte. Bei einigermaßen starker Transpiration kommt der Wurzeldruck daher in der geschilderten Weise überhaupt nicht zur Geltung. Wird eine kräftig verdunstende Pflanze am Wurzelstumpf abgeschnitten, so tritt aus diesem zunächst gar kein Wasser hervor, im Gegenteil, der Stumpf saugt dargebotenes Wasser begierig in sich auf (es herrscht also ein Druck unter Atmosphären-Größe). Erst nach seiner vollen Sättigung beginnt eine Auspressung. Im Freien kommt der Wurzeldruck nur dann zur Geltung, wenn bei feuchter kühler Luft, wie zumal des Nachts, die Transpiration sehr vermindert ist. Am günstigsten liegen die Umstände dazu im Frühjahr, wenn bei höchstem Wassergehalt des Holzes das transpirierende Laub noch nicht entfaltet ist. Bei Verletzungen des Holzkörpers quillt dann der „Saft“ aus Tracheen und Tracheïden in Tropfen hervor. Ein Blutungsdruck über Atmosphärengröße bei belaubten Bäumen dürfte nur im tropischen Urwald vorkommen.
Daß die Transpiration eine Saugung von Zelle zu Zelle bewirkt, ist schon hervorgehoben (S. 196), und es ist ohne weiteres verständlich, daß diese sich dann von den Parenchymzellen in die angrenzenden Gefäße fortsetzt. Auch ist diese Saugkraft leicht zu demonstrieren.
Ein abgeschnittener, in Wasser gestellter Sproß zeigt durch sein Frischbleiben an, daß er das Wasser bis in seine obersten Zweigspitzen zu heben vermag. Er leistet aber noch mehr: luftdicht mit einem langen wassergefüllten Rohre verbunden, vermag er leicht eine Wassersäule von 2 Metern und mehr emporzusaugen; wird das untere Ende des Rohres in Quecksilber gebracht, dann wird selbst dieses bis zu ansehnlicher Höhe gehoben. Kräftige, sonst unverletzte Koniferenzweige sind imstande, das Quecksilber unter Umständen bis weit über Barometerhöhe zu heben, ohne zu welken. Bedingung für eine solche Saugung ist einerseits ein luftdichter Abschluß der Wasserbahnen, andererseits eine nicht unbeträchtliche Kohäsion der Flüssigkeiten, die gehoben werden. Tatsächlich erreicht denn auch die Kohäsion des Wassers ganz gewaltige Werte; nach den Messungen von URSPRUNG und RENNER etwa 300 Atmosphären. So konnte man zu der Vorstellung kommen, daß der Zug der Transpiration durch die Kohäsion des Wassers bis in die Wurzelspitzen sich fortpflanze. Die Versuche RENNERs, die den Nachweis beträchtlicher negativer Drucke in den Leitbahnen transpirierender Pflanzen erbracht zu haben schienen, sind von anderer Seite stark angezweifelt worden[153]. Somit ist die Kohäsionstheorie[154] noch nicht bewiesen. Wenn wirklich die Saugung durch Kohäsion des Wassers nach unten weitergegeben werden soll, dann müßten die Gefäße kontinuierlich mit Wasser erfüllt sein, während man tatsächlich Luft- und Wassersäulchen in ihnen gefunden hat. Mit Eintreten eines Zuges müssen sich die Luftbläschen expandieren, und in der Tat findet man in lebhaft transpirierenden Zweigen stark verdünnte Luft in den Gefäßen. Werden solche Gefäße unter Quecksilber durchschnitten, so stürzt dieses unter dem äußeren Luftdruck auf weite Strecken in sie hinein. Jedenfalls erfolgt das Reißen der Wasserfäden in Gefäßen durchaus nicht immer, weil die Kohäsion überwunden, sondern auch, weil die Adhäsion an die Wand dem Zug nicht mehr gewachsen ist, oder weil Luft durch die Wand tritt. Dadurch wird es verständlich, daß das Reißen in verschiedenen Elementen bei ganz verschiedener Spannung erfolgt, während die Kohäsion ja stets gleich groß sein muß. Es ist auch schon der Gedanke ausgesprochen worden, daß zweierlei Typen unter den Gefäßen existieren: 1. leitende (Tracheïden) mit hoher Inhaltsfestigkeit und 2. speichernde (Tracheen), die, weil in ihnen das Wasser leicht reißt, dieses auch leicht abgeben können[155]. — Die Vertreter der Kohäsionstheorie nehmen an, daß neben solchen lufthaltigen Bahnen immer auch völlig mit Wasser erfüllte existieren, und daß nur diesen eine Leitfähigkeit zukomme, während die anderen als Wassermagazine von Bedeutung sein sollen. — Es ist aber keineswegs ausgeschlossen, daß auch den lebenden Elementen, die in keinem Holzteil fehlen, eine Rolle bei der Hebung des Wassers zukommt.
b) Die Nährsalze.
Die Nährsalze, die von einer Pflanze aufgenommen werden, finden sich fast alle in der Asche wieder; nur die Stickstoffverbindungen fehlen. Demnach kann uns die nachstehende Tabelle über den Gehalt einiger Kulturpflanzen an Aschenbestandteilen schon einen gewissen Einblick in die Menge und die Verteilung der Nährsalze geben.
Pflanzenteile Asche in 100 Tln. der Trocken- substanz In 100 Teilen der Asche sind enthalten:
K2O Na2O CaO MgO Fe2O3 Mn3O4 P2O5 SO3 SiO2 Cl
Roggen (Körner) 2,09 32,10 1,47 2,94 11,22 1,24 — 47,74 1,28 1,37 0,48
„ (Stroh) 4,46 22,56 1,74 8,20 3,10 1,91 — 6,53 4,25 49,27 2,18
Erbsen (Samen) 2,73 43,10 0,98 4,81 7,99 0,83 — 35,90 3,42 0,91 1,59
„ (Stroh) 5,13 22,90 4,07 36,82 8,04 1,72 — 8,05 6,26 6,83 5,64
Kartoffel (Knolle) 3,79 60,06 2,96 2,64 4,93 1,10 — 16,86 6,52 2,04 3,46
Weintraube (Beere) 5,19 56,20 1,42 10,77 4,21 0,37 — 15,58 5,62 2,75 1,52
Tabak (Blätter) 17,16 29,09 3,21 36,02 7,36 1,95 — 14,66 6,07 5,77 6,71
Baumwolle (Faser) 1,14 36,96 13,16 17,52 5,36 0,60 — 10,68 5,94 2,40 7,60
Fichte (Holz) 0,21 19,66 1,37 33,97 11,27 1,42 22,96 2,12 2,64 2,73 0,07
Zu diesen Zahlen ist zu bemerken, daß sie keine konstanten Verhältnisse ausdrücken, daß vielmehr die Zusammensetzung der Asche je nach dem Kulturboden wechseln kann. Auch ist es vielleicht nicht ganz überflüssig, darauf aufmerksam zu machen, daß diese Oxyde der Mehrzahl nach erst bei der Veraschung gebildet werden. In der lebenden Zelle waren Salze gegeben und vor allem vielfach die Metalle an organische Säuren gebunden.
Man sieht aus dieser Tabelle zunächst einmal, wie allgemein verbreitet die Aschensubstanzen sind, erkennt aber andererseits auch sofort, daß sie in verschiedenen Pflanzen, ja sogar in verschiedenen Teilen einer Pflanze, in recht ungleicher Menge vorkommen. So findet sich z. B. in den Samen viel Phosphorsäure, dagegen wenig Kieselsäure und Kalk; das Stroh aber verhält sich gerade umgekehrt. Die Kartoffel enthält viel K2O und wenig CaO, während Fichtenholz reichlich CaO und wenig K2O besitzt.
Trotz ihrer allgemeinen Verbreitung wird man die Aschensubstanzen zunächst für Ballast, für eine zufällige Verunreinigung der organischen Pflanzensubstanz zu halten geneigt sein. Allein jeder Versuch, eine Pflanze aschenfrei zu erziehen, zeigt die Unentbehrlichkeit dieser Stoffe.
Daß die mineralischen Inhaltsstoffe der Pflanze wesentliche Bestandteile der Pflanzennahrung ausmachen, sprach zuerst BERTHOLLET 1803 aus; später (1832) betonte es KARL SPRENGEL, dann auch LIEBIG. Exakt bewiesen wurde diese wichtige Tatsache aber erst 1842 durch WIEGMANN und POLSTORFF.
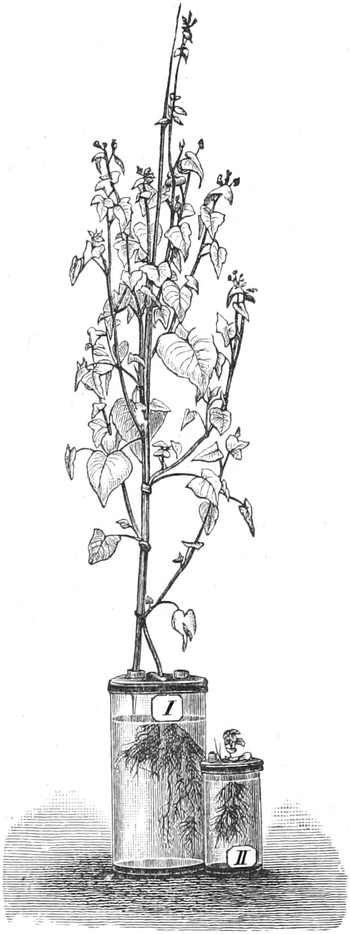
Fig. 243. Buchweizen in Wasserkultur. I In Nährlösung mit Kali. II In Nährlösung ohne Kali. Beide gleich stark verkleinert. Nach NOBBE.
Zwei Wege bieten sich, um diesen Nachweis zu führen und zugleich zu zeigen, ob alle oder nur gewisse Aschensubstanzen notwendig sind. Einmal kann man die Pflanze in künstlichem Boden kultivieren, der aus unlöslichen Substanzen (wie Platin, reiner Kohle, reinem Quarz) besteht und dem dann die in Frage stehenden Stoffe beigemengt werden. Bequemer ist der andere Weg, die sog. Wasserkulturmethode. Es hat sich gezeigt, daß viele Pflanzen ihr Wurzelsystem statt in Erde auch in Wasser entwickeln können. Man hat es dann in der Hand, diesem Wasser der Reihe nach alle Elemente der Asche in verschiedenen Verbindungen zuzusetzen und so zu erproben, was nötig, was überflüssig ist. Ein Blick auf Fig. 243 I zeigt, daß in einer solchen „Nährlösung“ von passender Zusammensetzung die Pflanze (Buchweizen) gut gedeiht; sie produziert Wurzeln, Sprosse, Blüten und Früchte und vermehrt dabei ihr Trockengewicht auf das Hundert- oder Tausendfache, gerade wie wenn sie in gutem Boden stände. In destilliertem Wasser dagegen wächst sie zwar anfangs ganz normal, stellt aber bald ihr Wachstum gänzlich ein und bleibt ein außerordentlich kümmerliches Gewächs.
Nährlösungen werden in recht verschiedener Zusammensetzung verwendet[156]. Besonders häufig wird die KNOPsche Lösung benutzt (Wasser 1000, Kalziumnitrat 1, Magnesiumsulfat 0,25, saures phosphors. Kalium 0,25, Kaliumnitrat 0,25, Eisenchlorid Spur). Die V. D. CRONEsche Lösung (Wasser 1000, Kaliumnitrat 1, Kalziumsulfat 0,5, Magnesiumsulfat 0,5, tert. Kalziumphosphat 0,25, Ferrophosphat 0,25), die statt des Ferrisalzes ein Ferrosalz enthält und die Phosphorsäure als fast ganz unlösliches Kalziumphosphat führt, wird manchmal mit Vorteil verwendet. Neuerdings sind von amerikanischen Forschern zahlreiche Salzkombinationen geprüft worden.
Der Erfolg einer solchen Wasserkultur lehrt, daß die typischen Landpflanzen mit einigen Verbindungen auskommen, die sich aus den Elementen K, Ca, Mg, Fe und H, O, S, P, N zusammensetzen — vorausgesetzt, daß ihnen außerdem noch der Sauerstoff und die Kohlensäure der Luft zur Verfügung stehen. Es sind also im ganzen 10 Elemente, aus denen sich die unentbehrlichen Nährstoffe aufbauen. Von ihnen interessieren uns an dieser Stelle nur die nach Ausschluß von H, O, C übrigbleibenden sieben, die als Nährsalze aus dem Boden bzw. dem Wasser aufgenommen werden müssen. Sechs davon finden sich in der Asche der Pflanze vor, eines, der Stickstoff, geht bei der Verbrennung in flüchtige Substanzen über. Daß diese sieben Elemente völlig unentbehrlich sind, ergibt sich daraus, daß das Fehlen jedes einzelnen auch durch den größten Überschuß der anderen oder eines ihm nahestehenden Elementes nicht kompensiert werden kann.
So kann z. B. Kalium im allgemeinen nicht durch Natrium, Lithium, Rubidium ersetzt werden. Niedere Organismen (Algen, Bakterien, Pilze) machen geringere Ansprüche als die höheren; sie können das Ca entbehren. Der Mangel eines notwendigen Elementes macht sich entweder nur in einer äußerst kümmerlichen Entwicklung der Pflanze bemerkbar (Fig. 243 II, Kalimangel) oder er ruft höchst charakteristische Veränderungen an ihr hervor. Am bekanntesten in dieser Beziehung ist die Wirkung des Eisenmangels. Ohne Eisen ergrünen die Pflanzen nicht (Chlorose). Bei Kalkmangel machen sich schwere Schädigungen (Vergiftungen) bemerkbar.
Die genannten Elemente werden häufig auch schlechthin als „Nährstoffe“ der Pflanze bezeichnet. Der Ausdruck ist indes nicht ganz korrekt, weil die Pflanze mit wenigen Ausnahmen die Elemente selbst gar nicht auszunützen vermag. H und O können das Wasser durchaus nicht ersetzen, und metallisches Kalium ist ebenso unverwendbar wie Schwefel. Die Pflanze bedarf ganz bestimmter Salze oder — da diese im Wasser zum Teil ionisiert werden — bestimmter Ionen. Von Kationen sind nötig: K+, Ca++, Mg++, Fe++ (oder Fe+++), von Anionen SO4– –, H2PO4– und NO3–. Während nun der Phosphor und der Schwefel in keiner anderen Verbindung Verwertung finden kann, ist das beim Stickstoff anders; er kann auch als Kation NH4+ in vielen Fällen wohl ebenso gute Dienste leisten wie als NO3–.
So wie C, N, H und O beteiligen sich auch manche Nährsalzelemente am chemischen Aufbau wichtiger Pflanzenstoffe: so S und P, die im Eiweiß und in Eiweißderivaten vorkommen, so das Mg, das im Chlorophyllfarbstoff auftritt. Möglich ist es, daß auch die anderen Metalle in Verbindungen notwendiger Stoffe eingehen, sicher aber spielen sie auch noch eine ganz andere, nämlich eine physikalisch-chemische Rolle. Die Salze greifen in alle physiologischen Prozesse regulierend ein und erhalten das kolloidale Protoplasma in normalem Zustand.
Neben dem positiven Ergebnis der Notwendigkeit gewisser Salze hat die Wasserkultur auch gezeigt, daß viele normalerweise von der Pflanze aufgenommene Stoffe entbehrlich sind, so vor allem Natrium, Chlor und Silizium.
Das Natrium ist selbst bei den Halophyten, bei denen es in größter Menge gefunden wird, entbehrlich. Diese Pflanzen leben auf kochsalzhaltigem Boden, nicht weil sie das NaCl zu ihrer Entwicklung nötig haben, sondern weil sie es besser ertragen als andere Pflanzen, deren Konkurrenz also an solchen Lokalitäten ausgeschlossen ist. Ihre charakteristische sukkulente Ausbildung (Fig. 193) verlieren die Halophyten freilich mehr oder weniger, wenn ihnen das Kochsalz entzogen wird. Den Diatomeen und gewissen Meeresalgen scheint Na unentbehrlich zu sein[157].
Silizium ist auch den Schachtelhalmen und den Gräsern, die sehr reichlich SiO2 führen, entbehrlich; dagegen brauchen es die Diatomeen, deren Schalen fast ganz aus Kieselsäure bestehen. Diesem Umstande verdanken sie ihre Dauerhaftigkeit. Diatomeenschalen bilden ja als Kieselgur mächtige geologische Ablagerungen. Aluminium[158] ist zwar in kleinen Spuren allgemein verbreitet, wird aber nur von wenigen Pflanzen in beträchtlicher Menge aufgenommen (z. B. Lycopodium-Arten); nach STOKLASA soll es den Wasserpflanzen unentbehrlich sein. Jod, im Meerwasser kaum in Spuren analytisch nachweisbar, wird in Meeresalgen trotzdem reichlich aufgespeichert, so daß diese lange Zeit das Material für die Jodgewinnung bildeten. Ob es diesen Pflanzen entbehrlich ist, wissen wir nicht.
Entbehrliche Aschenbestandteile können der Pflanze insofern nützlich sein, als sie die unentbehrlichen Bestandteile in allgemeineren Eigenschaften, so als Basen zur Neutralisation von Säuren u. dgl., vertreten und damit die unentbehrlichen Stoffe für ihre speziellen Wirkungen, in denen sie unersetzbar sind, in vollem Umfange disponibel machen. So kann Na partiell das K und Ca bis zu einem gewissen Grade das Mg ersetzen. Auch können manche Stoffe und Stoffgemische der Pflanze nützlich und zu ihrem Gedeihen förderlich werden, ohne gerade unentbehrlich zu sein. So gedeihen viele Pflanzen, z. B. der Buchweizen besser, wenn ihnen Chloride zur Verfügung stehen, und die Kieselerde wirkt u. a. in hohem Grade nützlich durch die größere Widerstandsfähigkeit, die sie den Geweben verleiht. Auch hat man gefunden, daß die Gegenwart gewisser, an sich nicht wertvoller Stoffe die Giftwirkungen anderer zum Teil auch nötiger Stoffe aufheben kann.
Daß auch die Tiere die Salze ebenso nötig haben wie die Pflanzen, ist bekannt. Einzelerfahrungen scheinen hier aber nur sehr wenig vorzuliegen. Man darf vielleicht sagen, daß im Tierreich dieselben Elemente notwendig sind wie in der Pflanze, daß aber Na und Cl dazu treten.
Aufnahme der Nährsalze. Die Nährsalze können nur in gelöstem Zustande von Oberflächenzellen der Pflanze aufgenommen werden. Es erhebt sich also die Frage, wie gelöste Stoffe durch die Zellwand und das Protoplasma bis in die Vakuole gelangen können. Es wurde ja bei Besprechung der Plasmolyse (S. 192) hervorgehoben, daß das Protoplasma semipermeabel, d. h. wohl für Wasser, aber nur schwer für gewisse, in Wasser gelöste Stoffe permeabel ist. Wäre diese Impermeabilität eine vollständige, so könnten sich im Zellinnern unmöglich Nährsalze vorfinden; tatsächlich ist sie aber vielleicht für keinen Stoff eine absolute, und wir kennen stufenweise Übergänge von Stoffen, die ebenso leicht durch das Plasma dringen wie das Wasser, bis zu solchen, die fast gar nicht durchgehen. Nicht zu langsam eindringende Stoffe bewirken eine vorübergehende Plasmolyse. Außerordentlich rasch diffundierende Stoffe, z. B. Alkohol, Äther, Chloralhydrat, verursachen keine Plasmolyse.
Die Permeabilität des Protoplasmas ist keine konstante. Sie wird wenigstens für manche Stoffe durch Außenumstände verändert[159]; Alkalisalze z. B. bewirken eine zunehmende Impermeabilität für sie selbst. Aber auch Erdalkalisalze können die Permeabilität für Alkalisalze vermindern. Nicht das Gesamtprotoplasma, sondern nur die äußerste Hautschicht ist für Aufnahme oder Nichtaufnahme eines Stoffes maßgebend. Auch der Übertritt der Stoffe in den Zellsaft wird durch eine Plasmahaut (die Vakuolenwand) reguliert. Die Eigenschaften dieser beiden Plasmahäute bedingen also zusammen mit dem Speichervermögen, von dem alsbald die Rede sein soll, das sog. Wahlvermögen der Zelle; dieses äußert sich darin, daß eine Pflanze manche in ihrer Umgebung häufige Stoffe gar nicht oder in ganz geringer Menge aufnimmt, und daß verschiedene Spezies in der Stoffaufnahme stark differieren.
Aus demselben Boden nimmt die eine Pflanze vorzugsweise Kieselsäure, die andere vornehmlich Kalk, eine dritte Kochsalz auf. Besonders lehrreich in dieser Beziehung sind die Meeresalgen, die von einer Lösung umspült werden, die etwa 3% Kochsalz, dagegen wenig Kalisalze enthält. Trotzdem nehmen ihre Zellen verhältnismäßig wenig Kochsalz, dagegen reichlich Kalisalze auf.
Jeder Stoff, für den die Grenzschichten des Protoplasmas permeabel sind, kann so lange in die Vakuole diffundieren, bis die Konzentrationsdifferenz zwischen dieser und der Umgebung ausgeglichen ist. Mit der Herstellung dieses physikalischen Gleichgewichtes hört aber die Diffusion keineswegs immer auf; in nicht wenigen Fällen findet sich schließlich eine bestimmte Substanz in der Zelle in relativ viel größerer Menge als in der Umgebung. Das trifft z. B. für das Jod in den Meeresalgen zu; dieses ist ja im Meer selbst nur spurenweise, in den Tangen aber in so ansehnlicher Menge vorhanden, daß man es aus ihnen technisch gewinnen kann. Die Zelle hat also ein Speichervermögen, und sie speichert die Stoffe dadurch, daß sie sie in eine unlösliche oder in eine nicht diffusible Form bringt.
Ganz vorzüglich eignen sich gewisse organische Farbstoffe[160], wie z. B. Methylenblau, zum Nachweis des Eindringens und der Speicherung. Viele Zellen enthalten in den Vakuolen Gerbstoffe und andere Stoffe, die mit dem eintretenden Farbstoff eine Verbindung eingehen, die nicht diffusibel oder gar unlöslich ist. Demnach sieht man auch in äußerst verdünntem Methylenblau die Vakuole tief blau werden oder in ihr blaue Niederschläge auftreten. — Besonders zu betonen ist, daß das Protoplasma selbst ungefärbt bleibt und nicht im mindesten geschädigt wird; totes Plasma würde ja den Farbstoff stark speichern.
Ein genaues Studium des Durchtritts von Farbstoffen durch das Protoplasma hat wertvolle Einblicke in die Ursachen der Permeabilität gestattet, ohne z. Z. zu einer allseits anerkannten Theorie zu führen. — Vorauszuschicken ist die Bemerkung, daß nicht alle Zellen sich gleich verhalten. So nehmen z. B. die an Gefäße angrenzenden die sauren Farbstoffe leicht auf, während sonst fast nur basische Farben durchgelassen werden. Da nun die basischen Farbstoffe in den Lipoiden, d. h. in Fetten und fettähnlichen Körpern (Lezithin, Cholesterin) löslich sind, die Säuren aber nicht, so hat man die Vorstellung entwickelt[161], die Hautschicht des Protoplasmas bestehe aus einer Lipoidschicht, und diese Ansicht hat mit einigen Modifikationen auch heute noch recht viel für sich. Denn die anderen Hypothesen, die ausgesprochen wurden, haben sich alle schwerwiegender Einwände zu erwehren, z. B. die Ultrafiltertheorie[162], nach der das Eindringen der Farbstoffe lediglich von ihrer Teilchengröße abhängen soll, das Protoplasma also wie ein Sieb wirken würde; die Haftdrucktheorie[163], nach der die Fähigkeit eines Stoffes, die Oberflächenspannung des Wassers zu erniedrigen, maßgebend für seine Aufnahme in die Zelle sein soll.
Wie in unseren Wasserkulturen, so nehmen auch in der Natur manche Pflanzen die Nährsalze aus dem Wasser auf. Dies ist der Fall bei manchen Wasserpflanzen, bei denen dann die ganze Oberfläche in den Dienst dieser Aufnahme gestellt sein kann. Da die Nährsalze nur spärlich in den Gewässern vorkommen, so ist es verständlich, daß die Wasserpflanzen eine recht große Oberfläche zu ihrer Aufnahme benötigen; so erklärt sich zum Teil das häufige Vorkommen fein zerteilter Blätter bei ihnen. Aber nicht allen Wasserpflanzen genügen die im Wasser gelösten Nährsalze. Manche nehmen mit Hilfe ihrer Wurzeln aus dem Boden am Grunde der Gewässer Stoffe auf und gedeihen nicht, wenn sie der Wurzeln beraubt werden.
Ganz allgemein erfolgt bei den Landpflanzen die Nährsalzaufnahme aus dem Boden. Im Wasser des Erdbodens sind die in unserer Nährlösung gegebenen oder ähnliche Salze stets vorhanden, aber manche von ihnen in so minimalen Mengen, daß sie nur für kurze Zeit Pflanzenwachstum gestatten. Wo solches längere Zeit anhält, da müssen andere Quellen für die Nährsalze bestehen. In der Tat gibt der Nährsalzgehalt des Bodenwassers keinen Maßstab für die Fruchtbarkeit des Bodens ab; denn die Pflanze ist nicht auf diesen allein angewiesen, sie kann vielmehr auch im Boden „absorbierte“ Stoffe aufnehmen und selbst Gesteine aufschließen. Die Erschließung erfolgt in erster Linie durch Ausscheidung von Kohlensäure aus den Wurzelhaaren. In kohlensäurehaltigem Wasser sind viele Stoffe ungemein viel leichter löslich als in reinem Wasser.
Die Lösung fester Gesteine durch die Pflanze läßt sich besonders bequem an glatt polierten Marmorplatten demonstrieren, auf denen man Wurzeln hat wachsen lassen; der Verlauf der Wurzeln wird durch Ätzfiguren wiedergegeben.
Es fehlt nicht an Angaben, wonach solche Gesteinslösungen auch durch stärkere Säuren als Kohlensäure zustande kommen sollen; aber es liegt keinerlei Beweis vor, daß höhere Pflanzen aus lebenden Zellen andere Säuren ausscheiden als CO2. Wenn so schwer lösliche Substanzen wie Feldspat und Glimmer von gewissen Flechten gelöst werden, so ist hier an der Ausscheidung einer stärkeren Säure[164] aus der Pflanze um so weniger zu zweifeln, als ja Pilze und Bakterien sehr häufig in ihrem Stoffwechsel solche Stoffe produzieren und ausscheiden. Da nun im Boden eine große Menge von Bakterien lebt, so müssen auch diese eine Rolle bei der Auflösung schwer löslicher Gesteine spielen.
Auch die aus toten Wurzelhaaren und Wurzelhaubenzellen austretenden sauren Salze dürften bei der Lösung der Gesteine von Bedeutung sein.
Manche Böden, vor allem die tonigen und humösen, nicht aber die Sandböden, haben die Fähigkeit, Kali- und Ammoniaksalze, in geringerem Grade auch Kalk- und Magnesiumsalze, in der Weise festzuhalten, daß diese Stoffe zwar nicht leicht ausgewaschen werden, aber doch der Pflanze zugänglich sind. Man schreibt dem Boden ein Absorptionsvermögen für die genannten Stoffe zu. Dieses besteht aber nicht für alle Nährsalze; so werden z. B. Sulfate und Nitrate nicht absorbiert.
Wenn das Substrat der Pflanze außer Wasser und Nährsalzen auch noch andere Stoffe, z. B. gelöste organische Stoffe enthält, so können diese in der gleichen Weise aufgenommen werden wie die besprochenen Substanzen. Der Erfolg der Wasserkultur beweist aber, daß wenigstens die typische grüne Pflanze auf solche Stoffe nicht angewiesen ist. Anders ist das bei Pilzen und anderen Pflanzen, die den Pilzen in ihrem Stoffwechsel gleichen (S. 219).
Neben Wasser und den Nährsalzen können auch gelöste Gase durch die Wurzel aufgenommen werden; von diesen wird im allgemeinen nur dem Sauerstoff eine Bedeutung zukommen. Hauptquelle für die Gasaufnahme bildet die Atmosphäre.
Wanderung der Nährsalze. Die aufgenommenen Nährsalze bleiben nicht in den Epidermiszellen der Wurzel bzw. des Sprosses, sondern sie wandern von der Aufnahmestelle aus durch die ganze Pflanze. Für diese Wanderungen gibt es zwei Wege, den der Diffusion und den der Massenströmung. Bedingung für die Diffusion ist, daß Zellwand und Protoplasma für die betreffende Substanz permeabel sind, und daß ein Konzentrationsunterschied zwischen dem Ausgangspunkt und dem Ziel der Wanderung besteht. Bei dem Übertritt von Stoffen aus einer Vakuole in die Vakuole der Nachbarzelle müssen diese zunächst ins Protoplasma, dann in die Zellwand, dann wieder ins Protoplasma und endlich in die Vakuole übertreten. Eine besondere Schwierigkeit bei dieser Wanderung scheint die Zellwand zu bieten, wenigstens wenn sie dick ist. Dementsprechend sind alle dickeren Zellhäute mit Tüpfeln versehen, und die Schließhäute der Tüpfel sind noch von zarten Protoplasmafäden (Plasmodesmen, S. 36) durchsetzt; ja bei gewissen Elementen der Pflanze, den Siebröhren, werden die Tüpfelschließhäute resorbiert, und es gehen dementsprechend dickere Stränge von Protoplasma in die Nachbarzelle hinüber. Die Untersuchungen von BROWN und ESCOMBE haben ergeben, daß eine feinperforierte Wand der Diffusion keinen wesentlichen Widerstand leistet.
Auch innerhalb der Zelle können Diffusionsbewegungen eintreten, wenn gelöste Stoffe nicht überall gleiche Konzentration aufweisen. Jede Diffusionsbewegung verläuft nun recht langsam. Ein mg NaCl z. B. braucht, um aus 10%iger Lösung einen Meter weit in Wasser zu diffundieren, fast ein Jahr; andere Stoffe diffundieren noch erheblich langsamer. Die Geschwindigkeit der Mischung kann aber erheblich beschleunigt werden, wenn zu der molekularen Diffusionsbewegung eine Massenströmung hinzutritt, wie wir sie im gewöhnlichen Leben und im Laboratorium durch Umrühren herstellen. Eine solche Mischung innerhalb der Zelle kann z. B. durch die Protoplasmabewegung erzielt werden. — Je länger nun eine Zelle ist, desto geeigneter wird sie zum Stofftransport durch die Pflanze, weil dann nur noch selten, nämlich an den Enden der Zelle, die langsame Diffusionsbewegung eintreten muß, während im übrigen Massenbewegungen Platz greifen können.
Wo es der Pflanze auf besonders lebhafte Stoffbewegung ankommt, da verwendet sie Massenströmungen in Röhren, die sie sich durch Auflösung von Querwänden in ganzen Zellzügen herstellt (Tracheen), und so sehen wir, daß die Nährsalze innerhalb der Pflanze mit dem Transpirationsstrom wandern. Bei der „Wasserbewegung“ in den Leitbündeln wird demnach kein reines Wasser, sondern eine sehr verdünnte Nährlösung transportiert, und die Transpiration hat in erster Linie den Erfolg, diese Nährlösung einzuengen, in zweiter Linie, sie rasch überallhin zu führen. Sonst wäre die Transpiration schwer verständlich, und die Pflanze hätte sie gewiß allgemein eingeschränkt. Da wo sie tatsächlich eingeschränkt ist (vgl. S. 144), haben wir es mit Pflanzen zu tun, die wegen geringer Versorgung mit Nährsalzen und auch wohl mit Kohlensäure nur langsam wachsen. — Erwähnt muß freilich werden, daß offenbar auch gelegentlich ein Überfluß an Nährsalzen im Innern der Pflanze auftritt, der schädliche Wirkungen ausüben kann, und von dem die Pflanze vor allem durch Guttation (S. 200) sich zu befreien sucht.
Nährsalze und Landwirtschaft. Wenn die Pflanze somit immer neue Nährsalze aus dem Boden aufnimmt, so muß dieser allmählich an diesen Stoffen verarmen, wenn nicht für Ersatz gesorgt wird. In der Natur geschieht das dadurch, daß die absterbenden und abfallenden Teile wieder auf und in die Erde gelangen und ihren Gehalt an Nährsalzen neu aufkommendem Leben zur Verfügung stellen. Bei landwirtschaftlichem Betrieb aber werden große Mengen Pflanzensubstanz mit der Ernte entfernt, und ihr Nährsalzgehalt geht dem Acker verloren; höchstens ein Bruchteil davon kehrt mit dem Miste der Tiere dahin zurück. Auf dem Gehalte des Mistes an Nährsalzen beruht wenigstens zum Teil seine wachstumsfördernde Wirkung, die dem Praktiker seit alten Zeiten bekannt ist. Da indes diese Nährsalze der Quantität nach nicht genügen, um den Verlust zu decken, muß die Landwirtschaft zur künstlichen Düngung[165] greifen. Unter den Düngestoffen sind vor allen Dingen solche wichtig, die Stickstoff, Kalium und Phosphorsäure enthalten. Als stickstoffhaltige Substanzen finden neben dem Guano (der auch Phosphorsäure enthält) Chilisalpeter, schwefelsaures Ammonium und die neuerdings künstlich aus Luftstickstoff dargestellten Verbindungen, Kalziumcyanamid, salpetersaurer Kalk und vor allem Ammoniumbikarbonat und Harnstoff Verwendung. Kaliumsalze verschiedener Art werden für landwirtschaftliche Zwecke in großen Mengen bergmännisch gewonnen; das wichtigste unter ihnen ist wohl der Karnallit. Als Phosphorsäurequellen dienen die Thomasschlacke und das Superphosphat. Erstere ist tertiärer phosphorsaurer Kalk, der bei Verhüttung phosphorhaltiger Erze entsteht und äußerst fein zermahlen als „Thomasmehl“ verwendet wird. Superphosphat wird durch Aufschließen von phosphorsaurem Kalk mit Schwefelsäure gewonnen.
Boden und Pflanzengeographie. Nach den mitgeteilten Erfahrungen sollte man glauben, daß ein Boden, der eine Pflanzenspezies zu ernähren vermag, auch für jede andere geeignet sein müßte. Tatsächlich zeigt uns aber die Pflanzengeographie[166], daß die Beschaffenheit des Bodens einen weitgehenden Einfluß auf die Verteilung der Pflanzen ausübt. Das hängt damit zusammen, daß verschiedene Pflanzen an die Menge und Löslichkeit der notwendigen Stoffe verschiedene Ansprüche machen, ferner damit, daß neben den nötigen auch überflüssige Verbindungen in einem Boden sein können, die auf die einzelnen Spezies ganz verschieden wirken. CaCO3 z. B. und ebenso NaCl wirken auf manche Pflanzen giftig, während andere große Dosen dieser Stoffe ertragen können.
Es kommt indes bei der Pflanzenverteilung in ihrer Abhängigkeit vom Boden keineswegs bloß auf chemische Verhältnisse an. Auch die physikalischen Eigenschaften der Böden spielen eine große Rolle. Endlich kann auch eine Pflanze an einem Ort, der ihr an sich zusagen würde, deshalb fehlen, weil ihre Samen nie dahin gelangt sind.
c) Gase.
Wasser und Nährsalze werden, wie wir gesehen haben, im allgemeinen dem Boden entnommen, aber auch die Luft enthält Stoffe, die notwendig zum Gedeihen vieler Pflanzen sind, die also Nährstoffe genannt werden müssen. Es sind das die Kohlensäure und der Sauerstoff. Diese werden denn auch im allgemeinen aus der Luft aufgenommen; nur die submersen Wasserpflanzen beziehen sie aus dem Wasser. Im letzteren Falle erfolgt ihre Aufnahme genau so wie die von anderen gelösten Stoffen.
Sauerstoff. Entzieht man einer Pflanze den Sauerstoff, so werden meist alle Lebensäußerungen sistiert (vgl. S. 257). Diese Tatsache erscheint nicht wunderbar, da auch dem menschlichen Organismus der Sauerstoff unentbehrlich ist. (Weiteres s. S. 240.)
Kohlensäure. Viel weniger plausibel ist es dagegen für den Laien, daß auch die Kohlensäure der Pflanze unentbehrlich sein soll. Und doch ist das so. Wir setzen einer Wasserkultur keinerlei Kohlenstoffquelle zu, die Pflanze vermehrt aber trotzdem ihren Kohlenstoffgehalt; da bleibt keine andere Möglichkeit, als daß sie die Kohlensäure der Luft benützt. Kohlensäure ist in der gewöhnlichen Luft in einer Menge von etwa 0,3 pro Mille enthalten; ein Liter enthält also 0,3 ccm. Läßt man diese Luft über grüne Pflanzen streichen, die an hellem Licht stehen, so zeigt sich, daß ihr Kohlensäuregehalt abnimmt oder verschwindet; farblose Teile, wie Wurzeln, oder nichtgrüne Organismen, wie die Pilze, verhalten sich anders, sie absorbieren keine Kohlensäure. Wird nun ein grüner Pflanzenteil in einer Glasglocke gehalten, durch die man kohlensäurefreie Luft hindurchleitet, so stellt er bald sein Wachstum ein, und jede Vermehrung der Trockensubstanz hört völlig auf. Kohlensäure ist demnach ein unentbehrlicher Nährstoff; sie ist offenbar die Quelle für den Kohlenstoff der grünen Pflanze. Die in der Luft vorhandene prozentual geringe Menge reicht zur Ernährung dieser völlig aus (S. 216). Es zeigt sich ferner, daß die Zufuhr von organisch gebundenem Kohlenstoff zum Boden oder zur Nährlösung die Kohlensäure der Luft nicht entbehrlich macht; für die grüne Pflanze, die wir einstweilen allein im Auge haben, ist jedenfalls CO2 die beste Kohlenstoffquelle. Auch genügt es durchaus nicht, wenn wir einer solchen Pflanze die Kohlensäure im Boden oder in der Nährlösung zur Verfügung stellen. Sie muß unbedingt den Blättern geboten werden.
Andere Gase. Sauerstoff und Kohlensäure sind die einzigen Gase, die den gewöhnlichen Pflanzen notwendig sind. Der atmosphärische Stickstoff dagegen ist für die Mehrzahl der Pflanzen ohne jede Bedeutung (vgl. S. 224).
Aufnahme der Gase. Kohlensäure und Sauerstoff dringen zum Teil in die Epidermiszellen, zum größeren Teil aber durch die Spaltöffnungen in die Interzellularen und von diesen aus in die inneren Gewebe.
Weder in der Zellwand noch im Protoplasma existieren lufterfüllte Räume oder Kanäle, durch die Gase ins Zellinnere gelangen können. Deshalb ist eine Aufnahme der Gase nur in dem Grade möglich, als sie in der Zellhaut und im Protoplasma bzw. in dem diese Teile durchdringenden Wasser löslich sind. Die gelösten Gase verhalten sich dann gerade wie andere gelöste Stoffe, sie diffundieren in die Zelle. Je wasserreicher eine Zellhaut ist, desto leichter diffundieren die Gase durch sie. Die gewöhnliche Zellhaut ist in trockenem Zustande für Gase auf dem Wege der Diffusion nur sehr wenig durchlässig[167]; allein in der Natur findet sie sich ja immer mehr oder weniger wassergesättigt vor. Dagegen ist die Kutikula sehr wenig imbibitionsfähig für Wasser und stellt deshalb dem diosmotischen Gasdurchtritt erhebliche Schwierigkeit entgegen; doch ist sie keineswegs völlig undurchlässig.
Der Hauptsache nach erfolgt also die Gasdiffusion gar nicht durch die eigentliche Zellhautsubstanz, sondern durch die Stoffe, mit denen diese imprägniert ist. Da nun Kohlensäure in Wasser viel leichter löslich ist als Sauerstoff, so ist es begreiflich, daß sie auch schneller die wassergetränkte Zellhaut durchsetzt als der Sauerstoff. Aller Wahrscheinlichkeit nach gilt das gleiche auch bei der Kutikula. Da aber die Partiärpressung des Sauerstoffes in der Luft eine relativ ansehnliche, die der Kohlensäure dagegen eine recht geringe ist, so kann tatsächlich zwar Sauerstoff, nicht aber Kohlensäure in genügender Menge durch die Kutikula hindurch, und deshalb sehen wir, daß fast alle Organe, die nur Sauerstoff aufzunehmen haben, ohne Spaltöffnungen sind, daß dagegen an den Kohlensäure aufnehmenden Organen stets Spaltöffnungen sich vorfinden.
Nicht nur in der Luft, sondern auch im Boden finden die Pflanzen in der Regel so viel Sauerstoff, daß er in genügender Menge durch die Epidermiszellen eindringen kann. Eine Ausnahme bilden nur solche Organe, die in sauerstoffarmem Sumpfboden leben. Gehören diese einer Pflanze an, deren Sprosse sich in der Luft ausbreiten, so erfolgt die Sauerstoffaufnahme in der Regel in diesen Luftsprossen; weite Interzellularen, die stets bei den Sumpfpflanzen ausgebildet sind, sorgen dann dafür, daß der Sauerstoff auch den unterirdischen Teilen zuströmen kann. Manchmal aber (besonders bei Palmen und Mangrovepflanzen) werden besondere, aus dem Boden aufsteigende Atemwurzeln (Pneumatophoren, Fig. 186) ausgebildet, die an der Luft Sauerstoff aufnehmen.
Die Spaltöffnungen sind für den Gasaustausch je nach der Öffnungsweite der Spalte sehr verschieden leistungsfähig. Ihr Verschluß, der aus Gründen der Wasserversorgung unter Umständen nötig ist, hat nicht nur die Aufhebung der Transpiration zur Folge, sondern er unterbindet auch das Eindringen von CO2 in die Pflanze.
Es ist schon bei Gelegenheit der Wasserdampfabgabe darauf hingewiesen worden, daß die Spaltöffnungen trotz ihrer geringen Größe durch die enorme Zahl und dichte Anordnung die Diffusion fördern. Das gilt auch für die Aufnahme der Kohlensäure. Dementsprechend konnte denn auch gezeigt werden, daß beispielsweise ein Quadratmeter Blattfläche von Catalpa in der Zeiteinheit etwa 2⁄3 der Kohlensäuremenge absorbiert, die ein Quadratmeter 3–10%iger Natronlauge, frei der Luft ausgesetzt, dieser entreißt.
Die Bewegung der Gase von Zelle zu Zelle sowie ihr Austausch zwischen den Zellen und den Interzellularen erfolgt durch Diffusion; bei ihrer Bewegung in den Interzellularen können aber auch Massenströmungen erfolgen, wenn Druckzustände bestehen. Solche werden aber in der Interzellularenluft durch Erwärmung und Abkühlung oder durch Deformation der Pflanze erzielt. Die Interzellularen sind ein weitverzweigtes System untereinander und mit der Atmosphäre kommunizierender Lufträume. Ihre Austrittsöffnungen werden in erster Linie durch die Spaltöffnungen, daneben auch durch Lentizellen und ähnlich funktionierende Organe gebildet (S. 43, 50); durch sie erfolgt ebensowohl Diffusion wie Massenbewegung der Gase.
Der Zusammenhang der Interzellularen unter sich und mit der Außenwelt läßt sich experimentell leicht feststellen. Es gelingt nämlich, Luft aus den Spaltöffnungen oder den Lentizellen austreten zu lassen, wenn man sie in die Interzellulargänge einpreßt; auch umgekehrt treten bei mäßiger Saugung aus den freigelegten Interzellularen dauernd große Mengen von Luft heraus, die nur durch Spaltöffnungen und Lentizellen ihren Weg in die Pflanze gefunden haben können. Das S. 199 geschilderte Porometer läßt die Wegsamkeit der Spaltöffnungen und der Interzellularen für Luft besonders deutlich hervortreten.
In hervorragendem Maße sind luftführende Interzellularräume bei Wasserpflanzen und Sumpfgewächsen entwickelt (vgl. S. 142), wo sie oft bis zu zwei Drittel des Gesamtvolumens einnehmen. Die untergetauchten Wasserpflanzen verschaffen sich auf diese Weise eine Binnenatmosphäre, mit der ihre Zellen einen lebhaften Gaswechsel unterhalten können, da die Binnenatmosphäre durch Diffusionsvorgänge wieder mit der Umgebung in langsamem Austausch steht. Im übrigen sind diese Pflanzen bei ihrem Gaswechsel ganz auf Diffusionsvorgänge angewiesen, da ihnen Spaltöffnungen usw. zu fehlen pflegen. Aber auch Pflanzen, die Spaltöffnungen besitzen, können daneben auf diosmotischem Wege Gase gewinnen, vorausgesetzt, daß die Kutikula ihrer Epidermis gasdurchlässig ist.
III. Die Assimilation der Nährstoffe.
Die Pflanze wächst, sie bildet beständig neue Organe, und zur Herstellung dieser bedarf sie fortwährend neuer Nährstoffe. Die Nährstoffe ihrerseits werden aber nach ihrer Aufnahme verändert, es geht aus ihnen Pflanzensubstanz hervor; sie werden assimiliert, wie man zu sagen pflegt. Unter Assimilation eines Stoffes versteht man dementsprechend seine Überführung in Pflanzensubstanz. Besonders interessant sind solche Assimilationsvorgänge, bei denen tiefgreifende Veränderungen erfolgen, z. B. Überführung von anorganischen in organische Verbindungen, namentlich dann, wenn es uns mit künstlichen Mitteln noch nicht gelingt, die entsprechenden Reaktionen auch außerhalb des Organismus herbeizuführen. Ein solcher Prozeß ist z. B. die Assimilation des Kohlenstoffes bei der grünen Pflanze; hier geht aus Kohlensäure organische kohlenstoffhaltige Substanz hervor.
A. Assimilation des Kohlenstoffes.
1. Assimilation der Kohlensäure bei grünen Pflanzen.
In Wasserkultur nimmt die Trockensubstanz einer grünen Pflanze zu; diese aber besteht zur Hälfte aus Kohlenstoff, den wir der Nährlösung nicht zugesetzt haben. Sie bezieht ihn aus der Kohlensäure der Luft; sie führt die CO2 unter Mitwirkung des Sonnenlichtes in Zucker über. Dabei wird auch Wasser mitverarbeitet und Sauerstoff ausgeschieden; der Prozeß vollzieht sich also nach der Formel
6 CO2 + 6 H2O = C6H12O6 + 6 O2.
Nimmt man an, daß die Kohlensäure der Luft (das Kohlendioxyd, CO2) bei ihrer Lösung in der Zelle durch Wasseraufnahme zu H2CO3 wird, so dürfte sich die Zuckerbildung in zwei Hauptschritten vollziehen; beim ersten wird Sauerstoff abgespalten und Formaldehyd[168] gebildet:
H2CO3 = H2CO + O2,
beim zweiten wird der Aldehyd zu Zucker kondensiert:
6 H2CO = C6H12O6.
Es muß also für jedes verschwindende Volum Kohlensäure das gleiche Volum Sauerstoff auftreten. In der Tat haben eudiometrische Bestimmungen gezeigt, daß das zutrifft (WILLSTÄTTER). Der auftretende Sauerstoff kann aber, auch wenn er nur qualitativ nachgewiesen wird, als Indikator der Kohlensäurezerlegung dienen. So kann man z. B. eine in sauerstoffreiem Raum befindliche Pflanze bei Gegenwart von Phosphor dem Licht exponieren; die dann auftretenden Phosphordämpfe beweisen die Bildung von Sauerstoff. Oder man kann aus der Bewegung gewisser Bakterien, die zuvor unbeweglich im Wasser lagen, auf die Sauerstoffproduktion einer grünen Pflanze schließen (S. 290). Am anschaulichsten aber ist der Assimilationsnachweis mit Hilfe gewisser Wasserpflanzen, wie Helodea oder Potamogeton. Werden abgeschnittene, unter Wasser befindliche Sprosse oder Blätter dieser Pflanzen dem Licht exponiert, so sieht man alsbald einen lebhaften, kontinuierlichen Strom von Blasen der Schnittfläche enteilen. Fängt man das Gas in einem Reagenzglas (Fig. 244) in größerer Menge auf, so zeigt sich, daß es zwar keineswegs aus reinem Sauerstoff, aber doch immerhin aus einem sauerstoffreichen Gemisch besteht; ein glimmender Holzspahn beginnt in ihm zu brennen.
Das Auftreten von Sauerstoffblasen erklärt sich in folgender Weise. Die im Wasser gelöste Kohlensäure gelangt durch Diffusion in die grünen Zellen der Pflanze und wird da zerlegt. Der auftretende Sauerstoff ist viel weniger löslich als die Kohlensäure, und deshalb wird er in Gasform abgeschieden. Er tritt in die Interzellularräume, bewirkt hier eine Vermehrung des Druckes, und diese wird die Ursache des Austretens von Gasblasen an jeder Schnittstelle.
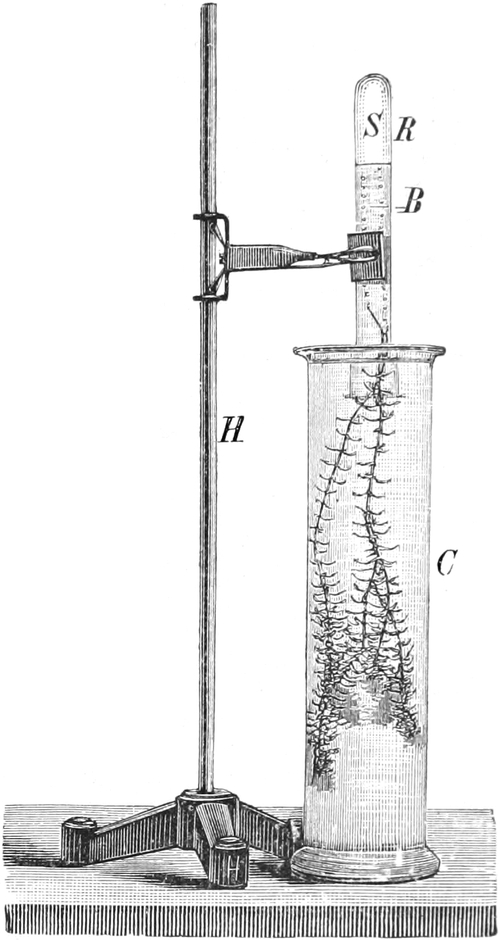
Fig. 244. Ausscheidung von Sauerstoff durch assimilierende Pflanzenteile. In dem Glaszylinder C befindet sich in Wasser eine frisch abgeschnittene Wasserpflanze (Helodea canadensis). Die Schnittflächen sind in ein ebenfalls mit Wasser gefülltes Probierröhrchen R eingeführt. Die ausgeschiedenen Sauerstoffbläschen B steigen darin auf und sammeln sich oben bei S. Nach NOLL.
Die Grundlagen unserer Kenntnisse über die CO2-Assimilation der grünen Pflanze wurden durch die Forschungen von PRIESTLEY, INGENHOUSZ, SENEBIER und Th. de SAUSSURE am Ende des 18. und am Anfang des 19. Jahrhunderts gewonnen. Diese Entdeckung ist außerordentlich bedeutsam, weil die Bildung organischer Substanz aus Kohlensäure durch die grüne Pflanze der Prozeß ist, der allen anderen Organismen, vor allem also auch den Tieren, das Leben auf der Erde ermöglicht (vgl. S. 220).
Mit Hilfe der Gasblasenmethode läßt sich leicht der Beweis für die oben aufgestellte Behauptung erbringen, daß nur chlorophyllführende Pflanzenteile, und diese nur im Licht imstande sind, CO2 zu assimilieren. So sieht man z. B. den Blasenstrom einer Helodea, der am hellbeleuchteten Fenster lebhaft war, in dem Maße, als man die Pflanze in die Tiefe eines Zimmers bringt, langsamer werden und schließlich bei einer Lichtintensität erlöschen, die unserem Auge noch gut das Lesen erlaubt. Innerhalb gewisser Grenzen läuft die Assimilation der Lichtintensität proportional. Entsprechende Versuche kann man auch mit künstlichen Lichtquellen ausführen; sie zeigen, daß alle gebräuchlichen Beleuchtungsarten bei der CO2-Assimilation verwendbar sind. Die Strahlen verschiedener Wellenlänge haben aber nicht alle die gleiche Bedeutung für die CO2-Assimilation[169].
Um die Assimilation im Licht verschiedener Wellenlängen zu untersuchen, bedient man sich entweder spektral zerlegten oder durch Absorption monochromatisch gemachten Lichtes. Zur Absorption können die von Schott u. Gen. hergestellten Rot- und Blaugläser verwendet werden, oder man benutzt doppelwandige Küvetten, deren Wandraum mit passenden Lösungen gefüllt ist.
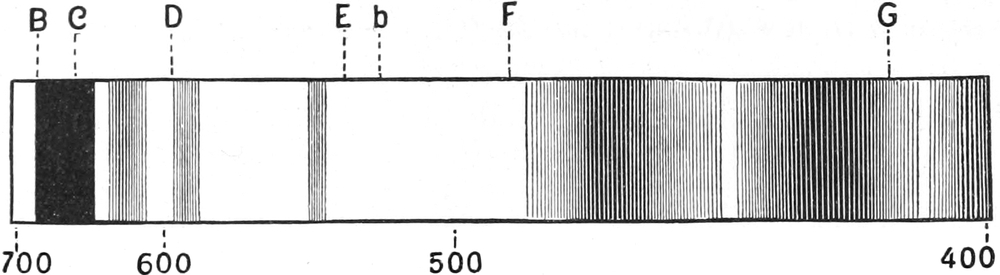
Fig. 245. Absorptionsspektrum des Chlorophylls nach GR. KRAUS. Oben sind die FRAUNHOFERschen Linien B, C usw. angegeben, unten die Wellenlänge 700–400 μμ. An den dunkeln bzw. schraffierten Stellen ist das Licht ausgelöscht bzw. geschwächt.
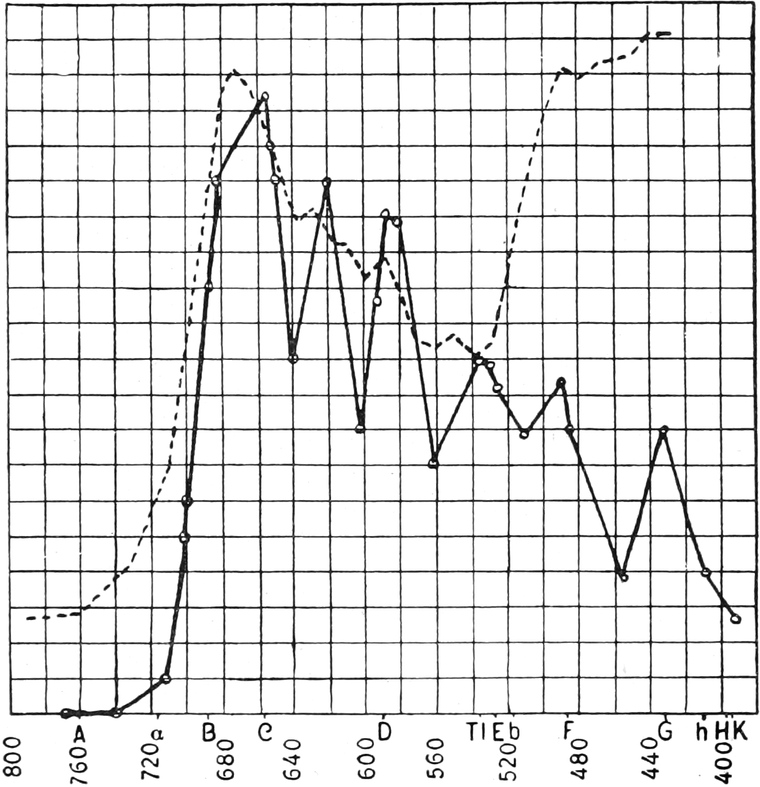
Fig. 246. Die ausgezogene Linie zeigt die Abhängigkeit der Stärkebildung von der Wellenlänge des Lichtes, wenn die auffallende Lichtenergie für alle Strahlen gleich ist. Die punktierte Linie stellt die vom grünen Farbstoff lebender Blätter absorbierte Strahlung dar, wobei die eintretende Strahlung = 100 gesetzt wird. Auf der Abszisse sind die Wellenlängen des Lichtes in μμ und einige FRAUNHOFERsche Linien angegeben (Gitterspektrum). Nach URSPRUNG.
Im großen und ganzen ist die assimilatorische Wirksamkeit auf die sichtbaren Strahlen von rund 0,4–0,8 μ beschränkt, doch ist sicher nachgewiesen, daß auch ultrarote und ultraviolette verwertet werden können. Wie sich die einzelnen Wellenlängen verhalten, ist sehr viel untersucht, aber bis heute doch nicht ganz sicher entschieden. Zweifellos hat das Licht von 0,68 μ, das maximal absorbiert wird, auch eine besonders starke assimilatorische Wirkung. Nach ENGELMANN soll allgemein eine weitgehende Übereinstimmung zwischen Lichtabsorption im Chlorophyll und Assimilation bestehen. URSPRUNG hat Bohnenblätter in jeweils zwei Ausschnitten eines Spektrums assimilieren lassen, die auf gleiche Lichtenergie abgestimmt waren, und hat so die Stärkebildung in allen Wellenlängen untersucht. Seine Resultate sind in der Fig. 246 dargestellt; es zeigt sich der erwartete Parallelismus, der freilich in Blau und Violett aufhört, weil da durch Verschluß der Spaltöffnungen die Zufuhr an CO2 zu gering wurde. KNIEP und MINDER haben die Assimilation in verschiedenfarbigem Licht mit der Gasblasenmethode untersucht: sie fanden, daß blaues Licht ebenso wirksam ist wie rotes, wenn es gleiche Energie liefert.
Auch gewisse als Purpurbakterien bezeichnete Organismen, die zwar kein Chlorophyll, wohl aber andere eigenartige Farbstoffe führen, zerlegen CO2; anscheinend nützen sie dabei gerade die Strahlen am meisten aus, die das Chlorophyll am wenigsten absorbiert und verwertet[170].
Wenn das Sonnenlicht in der Natur ein unentbehrlicher Faktor bei der CO2-Assimilation ist, dann wird es erst voll verständlich, warum die Laubblätter, deren wesentlichste Funktion in der CO2-Assimilation besteht, flächenförmig ausgestaltet sind. Ihre große Oberfläche gestattet ihnen, viel Licht zu absorbieren. Und nicht nur eine große Fläche, sondern auch eine geringe Dicke müssen die Laubblätter haben, wenn sie ihrer Funktion gut nachkommen sollen. In der Tat zeigte sich in Versuchen WILLSTÄTTERs, daß Sonnenlicht, das durch zwei Laubblätter hindurchgegangen ist, keine assimilatorische Wirkung mehr auszuüben vermag. Die Blätter müssen aber außerdem viel Chlorophyll enthalten. Daß das zutrifft, zeigt schon die dunkelgrüne Farbe der Blätter. Ein Blick ins Mikroskop bestätigt es. Die Stengel haben viel weniger Chloroplasten als die Blätter; die Wurzeln und andere unterirdische Organe haben keine.
Jeder Versuch zeigt nun, daß chlorophyllfreien Organen das Vermögen der CO2-Assimilation gänzlich abgeht. Das gilt nicht nur für die äußerlich sichtbaren groben Organe der Pflanze, sondern auch für die feinsten Teile der Zelle. Der Zellkern, das farblose Protoplasma geben im Sonnenlicht keinen Sauerstoff ab — das kann man mit Hilfe von Bakterien (S. 213) leicht nachweisen. Nur die Chloroplasten, und diese nur wenn sie „Chlorophyll“ führen, sind die tätigen Organe der CO2-Assimilation; etiolierte, panaschierte und chlorotische Chloroplasten sind nicht funktionsfähig.
Bei rotblätterigen Abarten grüner Pflanzen (Rotbuche, Rotkohl) ist das Chlorophyll ganz wie in den grünen Stammformen entwickelt und nur durch einen roten Farbstoff in der Epidermis oder in tieferliegenden Zellen verdeckt. Über die Farbstoffe der Rotalgen, Braunalgen und Diatomeen vgl. S. 15.
Nur ein verhältnismäßig geringer Teil, wenige Prozente, des einfallenden und absorbierten Lichtes wird übrigens bei der CO2-Assimilation verwendet[171]. Daß aber Licht als solches bei der CO2-Assimilation verschwinden muß, ist klar; denn woher anders sollte der Energiegehalt der organischen Substanz, die im Assimilationsprozeß erzeugt wird, stammen, als aus der Lichtenergie. Tatsächlich dient diese in der organischen Substanz enthaltene Energie der Pflanze zur Unterhaltung ihres Lebensgetriebes, und auch die durch unsere Dampfmaschinen erzeugten Kräfte sind auf die Assimilationsarbeit jener Pflanzen zurückzuführen, deren Holz oder deren verkohlte Reste (Kohle, Braunkohle, Torf) unter dem Maschinenkessel verbrennen. Denn beim Verbrennen dieser reduzierten Kohlenstoffverbindungen zu Kohlensäure wird nur die Energie wieder frei, die zuvor bei der Überführung der Kohlensäure in diese Brennstoffe gebunden wurde. Demnach handelt es sich bei der Bildung organischer Substanz nicht nur um den Gewinn von unentbehrlichen Baustoffen, sondern auch von Energie in einer Form, die eine leichte spätere Verwendung auch an anderen Orten ermöglicht (S. 237).
Da bei der CO2-Assimilation ein Energieaufwand nötig ist, so wird die S. 212 aufgeführte Formel vollständiger so geschrieben:
6 CO2 + 6 H2O + 684000 cal = C6H12O6 + 6 O2.
Nach den Untersuchungen von BROWN und PURIEWITSCH kann man annehmen, daß ein Blatt in der Natur etwa 80% des auffallenden Sonnenlichtes absorbiert; davon wird weitaus der größte Teil zur Erwärmung verwendet, denn nur etwa 0,5–6% dienen der Assimilation. Unter besonderen Versuchsbedingungen, bei schwachem, gelbem Licht, das voll absorbiert wurde, konnte WARBURG eine Ausnützung bis zu 70% für assimilatorische Zwecke feststellen[172].
Wie jede Lebensfunktion ist auch die Assimilationstätigkeit eines Chloroplasten von einer ganzen Menge von inneren und äußeren Faktoren abhängig. Zu den inneren gehört das Vorhandensein des Chlorophyllfarbstoffes und seine Einlagerung in einen lebendigen Chloroplasten; der Farbstoff als solcher, aus der Pflanze herausgelöst, vermag so wenig die Kohlensäure zu zerlegen wie ein Chloroplast, der den grünen Farbstoff aus irgendwelchen Gründen nicht entwickelt hat (im Dunkeln gebildeter, in eisenfreier Nährlösung entstandener Chloroplast, Leukoplasten der unterirdischen Teile oder der Epidermis), oder ihn verloren hat (Chromoplast). Da aber die Assimilation keineswegs immer dem Chlorophyllgehalt proportional erfolgt, muß man mit WILLSTÄTTER[173] annehmen, daß neben dem Chlorophyllfarbstoff noch ein anderer Faktor wesentlich ist, mag das nun das Protoplasma der Chloroplasten oder ein in ihm enthaltenes Enzym (S. 229) sein.
Von äußeren Faktoren ist vor allem das schon besprochene Sonnenlicht zu nennen. Nächst ihm dann die Gegenwart von Kohlensäure. Da diese nur in geringer Menge in der Luft vorhanden ist und durch andere Verbindungen nicht ersetzt werden kann (auch nicht durch Kohlenoxyd), so müßte das Leben der Pflanze und damit die Existenz aller Organismen schließlich aufhören, wenn nicht fortwährend neue Kohlensäure auf der Erde entstände. Man schätzt die Menge des Kohlensäurevorrates in der Luft auf 2100 Billionen kg, die Menge der Kohlensäure, die jährlich von den grünen Pflanzen des Festlandes konsumiert wird, auf 50–80 Billionen kg; demnach würden die Pflanzen in einigen 30 Jahren diesen Vorrat erschöpfen[174].
Die Luft erhält andauernd große Kohlensäuremengen durch die Atmung von Organismen, durch Verbrennung von Holz und Kohle und durch vulkanische Tätigkeit. Ein erwachsener Mensch atmet täglich etwa 900 g Kohlensäure (245 g C) aus, die ganze Menschheit, zu 1400 Millionen gerechnet, also allein schon etwa 1200 Millionen Kilo CO2 (340 Millionen Kilo C). Weitere große Massen von CO2 liefern die übrigen Tiere, dann aber auch die Pflanzen, insbesondere Pilze und Bakterien (vor allem die Bodenbakterien). Die aus sämtlichen Schornsteinen der Erde entweichende Kohlensäure liefert enorme Werte, da allein in Deutschland im Jahre 1911 neben 73 Millionen Tonnen Braunkohlen 161 Millionen Tonnen Steinkohlen gefördert wurden; letztere würden schon etwa 400000 Millionen Kilogramm Kohlensäure ergeben, also etwa 1⁄5000 der Gesamtmenge der in der Atmosphäre enthaltenen CO2.
Die Festlegung der Kohlensäure durch die grüne Pflanze und die Neuentstehung durch die angeführten Prozesse scheint annähernd zu einem Gleichgewicht zu führen. Man findet fast stets etwa 3 Liter CO2 in 10000 Liter Luft; im Winter ist bei uns die Menge etwas größer (3,0–3,6 Liter) als im Sommer (2,7–2,9 Liter). (Die Luft des Bodens ist wegen der Tätigkeit der Bakterien CO2-reicher.) Diese 3 Liter CO2 wiegen etwa 7 g; davon sind aber 8⁄11 Sauerstoff und nur 3⁄11 Kohlenstoff. In den 10000 Liter Luft sind demnach nur 2 g Kohlenstoff enthalten. In einem Baume von 100 Zentnern Trockengewicht sind etwa 50 Zentner oder 2500 Kilo Kohlenstoff angesammelt. Um diesen zu erlangen, muß der Baum also etwa 1250000 × 10000 Liter = etwa 12 Millionen Kubikmeter Luft von ihrer Kohlensäure befreit haben. Bei der Berücksichtigung solcher Zahlen findet man es begreiflich, daß die Entdeckung INGENHOUSS’ ungläubig aufgenommen, später ganz zurückgewiesen und vergessen wurde. Erst LIEBIG brachte sie in Deutschland wieder zur Geltung, und heute steht sie über allen Zweifel erhaben da. Die angeführten Zahlen haben aber nichts Ungeheuerliches, wenn man bedenkt, daß trotz des geringen Prozentgehaltes der Atmosphäre an Kohlensäure sich der tatsächlich vorhandene Vorrat auf etwa 2100 Billionen Kilo berechnet, in denen 560 Billionen kg Kohlenstoff enthalten sind. Den Pflanzen steht aber der ganze Vorrat des Luftmeeres zur Verfügung, da sich die Kohlensäure durch Diffusion und Luftströmungen immer wieder gleichmäßig ausbreitet.
Nach SCHRÖDER soll in den Landpflanzen der Erde der Kohlenstoff von 1100 Billionen Kilogramm CO2 festgelegt sein, also etwa die Hälfte des in der Luft enthaltenen; fast 90% davon kommt auf das Holz der Bäume. Die Tierwelt scheint ganz außerordentlich viel weniger Kohlenstoff zu enthalten, etwa 1% des in den Pflanzen angesammelten.
Submerse Wasserpflanzen nehmen die im Wasser gelöste Kohlensäure auf. Hier schwankt ihre Menge in sehr beträchtlicher Weise je nach der Temperatur. Bei 15° C enthält der Liter Wasser ungefähr ebensoviel CO2 als ein Liter atmosphärischer Luft. Neben der Kohlensäure spielen aber auch die gelösten Bikarbonate, die in Karbonat und CO2 dissoziieren, eine wichtige Rolle für den Kohlenstoffgewinn der Wasserflora. Eine künstliche Bereicherung des Wassers durch Einleiten von Kohlensäure vermehrt bis zu einem gewissen Grade die Assimilation.
Die geringe Menge der in der Luft enthaltenen Kohlensäure macht eine große aufnehmende Fläche notwendig. Somit sind auch aus diesem Grunde, nicht nur wegen der Lichtabsorption, die Laubblätter flächenförmig gestaltet. Eine Vermehrung des CO2-Gehaltes der Luft hat, wenn sie nicht zu weit geht, eine vermehrte Assimilation zur Folge. Demnach kann durch künstliche Anreicherung der Luft mit CO2 eine ganz erhebliche Steigerung der landwirtschaftlichen Produktion erzielt werden. Es unterliegt keinem Zweifel mehr, daß die günstigere Wirkung der Stallmistdüngung gegenüber der Zufuhr von mineralischem Dünger u. a. auch durch die fortgesetzte starke CO2-Produktion von Bakterien[175] bedingt ist, die im Boden die nötigen organischen Nährstoffe finden und die ihre Atmungskohlensäure aus dem Boden in die Luft übertreten lassen.
Wie alle Lebensprozesse ist auch die CO2-Assimilation von der Temperatur abhängig. Sie beginnt bei Temperaturen hart unter Null, erreicht ihren größten Wert bei etwa 37° C und hört bei etwa 45° C wieder auf.
Diese Kardinalpunkte haben nicht nur bei verschiedenen Pflanzen eine differente Lage, sondern sie bleiben auch bei einer bestimmten Pflanze nicht konstant. Insbesondere gilt das für das Optimum, da dieses im Laufe einiger Stunden von 37° auf 30° sinken kann. — Bei hellem, warmem Wetter erreicht die Assimilation ihren vollen möglichen Wert nicht, weil dann der Zufluß von Kohlensäure nicht genügend ist.
Andere weniger wichtige Faktoren sollen nicht im einzelnen aufgeführt werden; erwähnt sei nur, daß zahlreiche Substanzen eine temporäre oder schließlich auch dauernde Beschränkung oder Vernichtung der Assimilationsfähigkeit bewirken können.
Bis vor kurzem nahm man mit BLACKMAN an, daß bei gleichzeitiger Einwirkung der zahlreichen Faktoren, die für die CO2-Assimilation wichtig sind, immer einer, nämlich der im geringsten Ausmaß vorhandene, die Größe der Assimilation bestimme (Gesetz des Minimums). Neuere Untersuchungen[176] haben aber gezeigt, daß unter Umständen ebensowohl durch Steigerung der Beleuchtungsstärke wie durch Zunahme der Kohlensäure eine Vermehrung der Assimilation eintreten kann. — Entsprechende Resultate sind übrigens auch bei den Nährsalzen gefunden worden, wo früher nach LIEBIG das Minimumgesetz zu gelten schien.
Produkte der Assimilation der Kohlensäure. Wir nahmen oben an, es werde Zucker aus der Kohlensäure gebildet. In der Tat zeigt die Analyse eine Zunahme des Zuckergehaltes der Laubblätter bei Besonnung. Nicht immer und nicht ausschließlich wird freilich Traubenzucker nachweisbar sein, meist treten andere, kompliziertere Kohlehydrate auf. Diese lassen sich alle auf Hexosen wie Traubenzucker zurückführen, schließlich entsteht durch Zusammentreten mehrerer Hexosenmoleküle bei gleichzeitigem Wasseraustritt Stärke [(C12H20O10)n]. Stärke findet sich in Chloroplasten beleuchteter Laubblätter sehr häufig, doch keineswegs allgemein. — Hält man die Blätter einige Zeit im Dunkeln, so verschwindet die Stärke. Bringt man umgekehrt entstärkte Pflanzenteile ans Sonnenlicht, so bilden sich in ihren Chloroplasten oft in überraschend kurzer Zeit (5 Minuten) neue Stärkekörnchen, die dann bald an Größe zunehmen und schließlich die Substanz des Chloroplasten an Masse übertreffen. Da nun die Stärke mit Jodlösung sich blau färbt, kann man das Eintreten der Assimilation leicht makroskopisch demonstrieren (SACHSsche Methode).
Fig. 247. Assimilationsversuch mit dem Blatt der Aracee Ariopsis peltata. Verkleinert.
Blätter, die sich am Licht befanden, werden zunächst durch Alkohol ihrer grünen Farbe beraubt; sie bläuen sich dann nach Jodzusatz. Bei größerem Gehalt an Stärke tritt tiefe Blaufärbung ein, bei noch größerem endlich Schwarzfärbung. Die entstehende Farbennuance erlaubt also zugleich eine gewisse Schätzung der Quantität der Stärke. Um auch kleinere Mengen Stärke sichtbar zu machen, empfiehlt es sich, die entfärbten Blätter vor der Anwendung der Jodlösung in Kalilauge oder in Chloralhydratlösung zu legen, um die Stärkekörnchen durch Aufquellen zu vergrößern. — Mit dieser Methode des Assimilationsnachweises kann man auch sehr schön zeigen, daß nur an beleuchteten Stellen Stärke auftritt. Wird dem Blatt eine Schablone aus undurchsichtigem Material aufgelegt, die etwa das Wort „Stärke“ als Ausschnitt besitzt, so ergibt sich nach Beleuchtung und Behandlung mit Jod das Bild der Fig. 247: das Wort Stärke erscheint blau auf hellem Grunde. Statt einer Schablone kann man auch, wie MOLISCH gezeigt hat, ein geeignetes photographisches Negativ dem Blatt auflegen; nach Belichtung und Behandlung mit Jod erhält man dann eine positive Photographie (Fig. 248). Mit der gleichen Methode läßt sich auch unschwer der Nachweis erbringen, daß panaschierte Blattteile nicht assimilieren.
Bei manchen Pflanzen, z. B. vielen Monokotylen, kommt es in den Chloroplasten überhaupt nicht zur Bildung von Stärke, und das Assimilationsprodukt tritt gelöst in den Zellsaft über. Sorgt man aber für eine starke Anhäufung des Assimilationsproduktes, so findet auch hier Stärkebildung statt; in anderen Zellen dieser Monokotylen, in den Spaltöffnungsschließzellen und den Zellen der Wurzelhaube wird stets Stärke gebildet. Übrigens wird bei den anderen Pflanzen stets nur ein Bruchteil, bei Helianthus z. B. 1⁄6 der Assimilationsprodukte in Stärke umgewandelt, der Rest bleibt als Zucker erhalten oder wird sonst irgendwie verwertet. Man sieht daraus, daß man die Menge der gebildeten Stärke nicht ohne weiteres als Maß der Assimilation betrachten darf.
Daß die Stärkebildung nicht mit der Kohlensäureassimilation direkt zusammenhängt, sondern nur die Folge einer gewissen Anhäufung von Zucker in der Zelle ist, ergibt sich auch daraus, daß man Stärkebildung im Finstern erzielen kann, wenn man Blätter auf Zuckerlösungen von geeigneter Konzentration schwimmen läßt. Statt Zucker kann man mit gleichem Erfolg auch andere organische Stoffe verwenden, auch solche, die den Kohlehydraten ferner stehen, wie z. B. Glyzerin.
Fig. 248. Ein stärkefreies Blatt von Tropaeolum wurde mit einem Negativ-Porträt bedeckt der Sonne exponiert. Nach Assimilation ruft Jodlösung ein positives Bild hervor. Nach MOLISCH.
Bei manchen Algen kommen nicht Zucker und Stärke, sondern andere Assimilationsprodukte vor, z. B. Florideenstärke.
Was für Stoffe die sog. „Fettröpfchen“ sind, die vielfach in assimilierenden Zellen auftreten, und was für eine Beziehung zum Assimilationsprozeß sie haben, ist noch nicht aufgeklärt.
Die Quantität der Assimilate hängt einerseits von der Pflanzenspezies ab, die wir untersuchen, andererseits von den äußeren Umständen, unter denen die Pflanze weilt. Es hat sich gezeigt, daß unter möglichst günstigen Verhältnissen der Quadratmeter Blattfläche pro Stunde 0,5–1 g Trockensubstanz produzieren kann. — Wenn man bedenkt, wie viele Quadratmeter Blattfläche auf der Erde Tag für Tag assimilatorisch tätig sind, so bekommt man einen Begriff von der ungeheuren Produktion von organischer Substanz in dieser größten aller chemischen Fabriken. SCHRÖDER schätzt die organische Substanz, die durch die Landpflanzen jährlich gebildet wird, im Mittel zu 35 Billionen kg. Allein die deutsche Ernte enthielt im Jahre 1912 rund 9 Milliarden Kilo an Assimilaten im Getreide (Roggen, Weizen, Spelt und Gerste).
Es gibt zwei Methoden[177] zur Bestimmung der Assimilationsmenge. Die eine rührt von SACHS her. Nach seinem Vorgang verfährt man in folgender Weise: Am Morgen werden Teile von Blättern, gewöhnlich Hälften, sorgfältig ihrer Fläche nach ausgemessen, dann getrocknet und gewogen. Am Abend werden gleichgroße Flächen (die restierenden Hälften), die den Tag über dem Licht exponiert waren, ebenfalls getrocknet und gewogen. Die Gewichtszunahme bedeutet den Gewinn der Pflanze an C-Assimilaten (SACHSsche Blatthälftenmethode). — Eine ganz andere Methode zur quantitativen Bestimmung der CO2-Assimilation rührt von KREUSLER her und ist auch von GILTAY und BROWN benutzt worden. Man bringt ein an der Pflanze befindliches Blatt in einen abgeschlossenen Raum, der von einem konstanten Luftstrom durchflossen wird, und bestimmt nun die Menge Kohlensäure, die von dem Blatt der durchströmenden Luft entrissen wird. Die Menge von Zucker oder Stärke, die aus einer gegebenen Menge von Kohlensäure gebildet werden kann, läßt sich ja leicht berechnen.
2. Kohlenstoffgewinn einiger Bakterien[178].
Gewisse Bakterien, von denen auch später (S. 238) die Rede sein wird, zeichnen sich dadurch aus, daß sie bei Gegenwart von Karbonaten im Dunkeln und ohne Chlorophyll in rein anorganischer Nährlösung ihre Substanz vermehren; so die Nitrit- und Nitratbakterien, die Wasserstoff-, Eisen- und gewisse Schwefelbakterien sowie die Methanbakterien. Manche von ihnen sind durchaus auf den Kohlenstoffgewinn aus CO2 angewiesen, während andere, vor allem die Wasserstoffbakterien, daneben unter Umständen auch organisch gebundenen Kohlenstoff zu nutzen verstehen.
Über die Produkte der Kohlenstoffassimilation dieser Bakterien wissen wir noch gar nichts. Auch ist der Gewinn an organisch gebundenem Kohlenstoff gering. Es verdankt also jedenfalls nur ein ganz minimaler Bruchteil organischer C-Verbindungen, die momentan auf der Erde vorhanden sind, ihre Entstehung diesen Bakterien. Die Kohlensäureassimilation bei ihnen bleibt darum nicht minder interessant, zumal sie in wesentlich anderer Weise erfolgt als bei der grünen Pflanze. Vor allem findet sie ohne Gegenwart von Licht statt. Demnach muß hier eine andere Energiequelle beim Aufbau der organischen Substanz tätig sein als bei der grünen Pflanze; es ist die Energie, die durch Oxydation des Ammoniaks, des Nitrits, des Eisenoxyduls, des Schwefelwasserstoffes, Methans oder Wasserstoffes gewonnen wird. Man kann die Bildung der organischen Substanz bei der grünen Pflanze eine Photosynthese, bei den angeführten Bakterien eine Chemosynthese nennen.
3. Kohlenstoffgewinn der Heterotrophen.
Den Gewinn des Kohlenstoffes aus der Kohlensäure betrachtet man als typische Kohlenstoffassimilation der Pflanze, doch ist dieser Modus keineswegs der einzige im Pflanzenreich. Da er — von den eben besprochenen Bakterien sehen wir jetzt ab — an die Gegenwart von Chlorophyll und von Sonnenlicht gebunden ist, kann er bei den unterirdischen Pflanzenteilen, bei allen nichtgrünen Pflanzen und bei sämtlichen Tieren nicht in Betracht kommen. In der Tat sind diese auf organische Kohlenstoffverbindungen angewiesen, die direkt oder indirekt der Assimilationstätigkeit grüner Pflanzenteile entstammen. Man nennt alle Organismen, die in ihrer Ernährung von der Tätigkeit der grünen Pflanzen abhängig sind, heterotroph; die grünen Pflanzen und die soeben besprochenen Bakterien werden als autotroph bezeichnet. Doch auch die Autotrophen hängen von anderen Organismen ab. Es wird noch zu zeigen sein, daß das Leben auf der Erde nur dadurch sich kontinuierlich erhält, daß jede einseitige Veränderung der Stoffe, die sich unter dem Einfluß bestimmter Organismen ergibt, durch die Tätigkeit anderer Organismen wieder kompensiert wird. — Schon durch ihre Lebensweise, vor allem durch ihren Wohnort, weisen die heterotrophen Organismen darauf hin, daß sie andere Ansprüche auf Nährstoffe machen als autotrophe. Sie finden sich entweder als Parasiten auf oder in lebenden Pflanzen und Tieren, oder sie leben als Saprophyten von toten Organismen oder Derivaten derselben.
Die Ansprüche, die von heterotrophen Pflanzen an die Kohlenstoffquelle gemacht werden, lassen sich am besten bei saprophytischen Bakterien und Pilzen studieren. Man kann diese Organismen auf verschieden zusammengesetzten Substraten kultivieren und aus ihrem Gedeihen Rückschlüsse auf den Nährwert der dargebotenen Verbindungen ziehen. Die zur Kultur dienenden Nährlösungen müssen neben den unentbehrlichen Aschensubstanzen und einer Stickstoffquelle (etwa einem Ammoniumsalz) im allgemeinen Zucker als C-Quelle enthalten; sie sollen für Schimmelpilze schwach sauer, für Bakterien meistens schwach alkalisch oder neutral reagieren und werden oft durch Zusatz von Gelatine oder Agar-Agar in den festen Aggregatzustand übergeführt. In der Regel kann der Zucker durch zahlreiche andere organische Substanzen mehr oder minder gut ersetzt werden, z. B. durch andere Kohlehydrate, durch Fette, Eiweiß und Eiweißabbauprodukte, durch organische Säuren usw. usw. Während man nun für einen einzelnen Organismus diese C-Quellen nach ihrem Nährwert in eine bestimmte Reihenfolge bringen kann, ist das generell ganz unmöglich, denn es gibt nicht wenige Saprophyten, die sich ganz besonderen Bedingungen angepaßt haben, und die gerade solche C-Quellen mit Vorliebe verzehren, die bei der Mehrzahl der anderen kaum einen Nährwert besitzen (z. B. Ameisensäure, Kohlenwasserstoffe, Oxalsäure).
Aber selbst solche Saprophyten, die mit recht verschiedenen Kohlenstoffverbindungen auskommen (Omnivore), haben doch ein sehr feines Unterscheidungsvermögen für diese. So wird von dem Schimmelpilz Penicillium aus gewöhnlicher Weinsäure zunächst überwiegend die Rechtsweinsäure, von einer Bakterienart dagegen zuerst die Linksweinsäure verarbeitet. In einem Gemisch von Glykose und Glyzerin wird erstere von Aspergillus bevorzugt. Das Glyzerin wird also durch den Zucker vor dem Verbrauch geschützt (Elektion der Nährstoffe), während es, allein dargeboten, völlig aufgebraucht wird.
Sehr bemerkenswert ist die Fähigkeit mancher Pilze, auch solche organische Verbindungen auszunutzen, die wie Stärke, Zellulose usw. in Wasser unlöslich sind und demnach erst nach zuvoriger Verwandlung und Lösung aufnahmefähig werden. Diese Pilze und Bakterien scheiden Stoffe besonderer Art (Enzyme; vgl. S. 229) aus, die imstande sind, die betreffenden Stoffe zu spalten und damit löslich zu machen.
Die Saprophyten sind nach dem Gesagten durch die Art ihrer Assimilationstätigkeit charakterisiert: sie können den ersten Schritt der Assimilation des Kohlenstoffes, den die grüne Pflanze mit Hilfe des Lichtes vollzieht, nicht ausführen. Dagegen besteht aller Wahrscheinlichkeit nach im weiteren Verlauf der Assimilation, in dem Aufbau komplizierter Verbindungen, die den Körper zusammensetzen, aus der gebotenen einfachen organischen Verbindung kein Unterschied gegenüber den Autotrophen.
Über heterotrophe Blütenpflanzen vgl. auch S. 226.
Den Saprophyten stehen dann Parasiten gegenüber, die wir in reicher Auswahl bei Pilzen und Bakterien finden; doch fehlen sie auch unter den Algen, Cyanophyceen und den höheren Pflanzen nicht ganz.
Daß nun diese Parasiten oder wenigstens viele von ihnen Nährstoffe aus dem Wirte aufnehmen, sieht man dem letzteren oft direkt an; er kann durch den Parasiten schwer geschädigt, ja sogar schließlich getötet werden. Welche Stoffe aber im einzelnen es sind, die der Parasit aufnimmt und zu seinem Gedeihen bedarf, ist schwer zu sagen. Da vielfach nur Organismen einer bestimmten Verwandtschaft (Familie, Gattung, Art, Kleinart) von einer Parasitenspezies befallen werden, muß man annehmen, daß diese bezüglich Qualität und Quantität ihrer Nahrung ganz spezifische Anforderungen macht. Eine solche Vermutung wird noch dadurch unterstützt, daß man die Mehrzahl der Parasiten nicht unabhängig von ihrem Wirt kultivieren kann.
A. Assimilation des Stickstoffes.
Wenn die grüne Pflanze den Kohlenstoff als Kohlensäure aus der Luft bezieht, wo dieses Gas in relativ sehr geringer Menge vorhanden ist, so könnte man glauben, daß der Riesenvorrat von Stickstoff in der Atmosphäre die erste und die beste Quelle für den Bezug dieses Baustoffes sei. Jede Wasserkultur lehrt indes auf das eindringlichste, daß der Luftstickstoff von der typischen grünen Pflanze nicht ausgenützt werden kann. Läßt man den gebundenen Stickstoff aus der Nährlösung weg, so ist es mit dem Gedeihen der Pflanze vorbei.
In der KNOPschen Nährlösung war der Stickstoff als salpetersaures Salz geboten, und diese Form gilt auch heute noch als die beste für die höhere Pflanze. Immerhin muß zugegeben werden, daß auch gewisse Ammoniumverbindungen, z. B. schwefelsaures oder salzsaures Ammonium, den Nitraten gleichwertig sind, da sie nicht wie z. B. kohlensaures Ammonium durch alkalische Reaktion die Pflanze schädigen. Auch organische Stickstoffverbindungen können als Nährstoffe dienen, so z. B. Aminosäuren, Säureamide, Amine usw., doch ist wohl mit keiner von ihnen ein so guter Erfolg zu erzielen wie mit Salpetersäure. Auch salpetrigsaure Salze können eine brauchbare Stickstoffnahrung abgeben, wenn sie nicht durch zu hohe Konzentration schädigen.
Über die Assimilation der Salpetersäure und des Ammoniaks sind wir nicht annähernd so gut orientiert wie über die der Kohlensäure. Wir kennen den Ort der Assimilation nicht genau, wir wissen über die mitwirkenden äußeren Umstände nicht so gut Bescheid, und wir sind endlich über die auftretenden Produkte nicht ganz im klaren. In letzter Linie handelt es sich vor allem um Bildung von Eiweiß, also um eine sehr viel kompliziertere Substanz als die Kohlehydrate sind, eine Substanz, die neben C, H und O stets ca. 15 bis 19% N und außerdem auch noch S, eventuell auch P enthält. Einen Einblick in den Bau des Eiweißmoleküls haben uns vor allem die methodischen Studien über den Eiweißabbau gegeben. Sie zeigten, daß im Eiweiß eine große Anzahl von Aminosäuren durch Wasserabgabe miteinander verkettet sind. So wie nun EMIL FISCHER künstlich durch Zusammenschweißen von Aminosäuren und darauffolgende Kondensation eiweißähnliche Körper (Polypeptide) hergestellt hat, so wird es aller Wahrscheinlichkeit nach auch in der Pflanze sich darum handeln, daß zunächst solche Aminosäuren gebildet und dann gekoppelt werden. Betrachtet man nun die einfachste Aminosäure, das Glykokoll NH2CH2 · CO2H, das freilich in der Pflanze nicht sehr verbreitet ist, so zeigt sich, daß diese sich von der Essigsäure ableiten läßt, wenn man ein am Kohlenstoff hängendes H-Atom durch eine NH2-Gruppe ersetzt. Es muß also die aufgenommene HNO3 reduziert werden, wenn ihr Stickstoff zum Aufbau von Eiweiß verwendet werden soll. Diese Reduktion ist unabhängig von Sonnenlicht und Chlorophyll; auch im Dunkeln und von farblosen Teilen wird Salpetersäure assimiliert[179]. — Indirekt freilich wird das Chlorophyll und ebenso das Licht von Bedeutung für die Eiweißsynthese sein können, insofern als auch C-haltige organische Substanz für den Eiweißaufbau nötig ist, und diese in der Sonne vom Chlorophyll gebildet wird. Wegen ihres reichlichen Gehaltes an Kohlehydraten werden deshalb die Laubblätter besonders zur Eiweißbildung geeignet sein; sie sind aber durchaus nicht in dem Grade „Organe der Eiweißbildung“, wie sie Organe der Kohlehydratbildung sind. Auch kann man bei vielen Pflanzen (vor allem bei den Ruderalpflanzen, z. B. Chenopodium, Amarantus, Urtica) die Salpetersäure noch in den Blättern nachweisen, bei der Mehrzahl scheint sie schon sofort nach ihrer Aufnahme in der Wurzel verändert zu werden.
Ebensowenig wie über die Assimilation der Salpetersäure sind wir über die Assimilation des Ammoniaks unterrichtet. Da hierbei nicht erst eine Reduktion nötig ist, sollte man das Ammoniak für leichter assimilierbar halten als die Salpetersäure; in den Fällen, wo bei der Wasserkultur ein Zusatz von Ammoniak weniger günstig wirkt als Salpetersäure, werden wahrscheinlich irgendwelche Nebenwirkungen des NH3 in Betracht kommen.
Die hypothetischen Zwischenprodukte zwischen den aufgenommenen Stickstoffverbindungen und dem fertigen Eiweiß, d. h. verschiedene Aminosäuren und ihnen nahestehende Substanzen, fehlen wohl keinem Pflanzenteil. Besonders verbreitet sind Leucin, Tyrosin und Asparagin. Aber nur selten wird man mit Bestimmtheit entscheiden können, ob diese Stoffe synthetisch aus Ammoniak oder Salpetersäure, oder ob sie durch Eiweißabbau entstanden sind (vgl. S. 231).
Außer im Eiweiß finden wir den Stickstoff auch noch in den Lezithinen und den organischen Pflanzenbasen. Erstere sind komplizierte Ester, in denen sich Glyzerin mit zwei Molekülen Fettsäure, einem Molekül Phosphorsäure und der N-haltigen Base Cholin verbunden hat. Sie fehlen keinem lebenden Protoplasma. — Die meisten organischen Basen (Alkaloide) dürften Nebenprodukte der N-Assimilation sein und keine Verwendung mehr finden.
Wenn man im allgemeinen sagen kann, daß die typische autotrophe Pflanze den Stickstoff als Salpetersäure ebensogut oder besser zu assimilieren versteht wie als Ammoniak, so trifft das für die Mehrzahl der Pilze nicht zu. Nur wenige von ihnen nehmen überhaupt mit Salpetersäure vorlieb; in der Regel gelten Ammoniumsalze als beste anorganische N-haltige Nahrung für sie. Es ist oft behauptet worden, daß manche Pilze mit so einfachen Stickstoffverbindungen nicht auskommen, oder daß sie wenigstens leichter und sicherer aus organischen N-Verbindungen die komplizierteren Körpersubstanzen aufbauen. Da aber offenbar viele Fehlerquellen bei diesen Untersuchungen nicht berücksichtigt wurden, bedarf diese Frage einer erneuten Untersuchung[180].
An dieser Stelle müssen auch die insektenfressenden, fleischfressenden oder karnivoren Pflanzen genannt werden[181] (vgl. S. 158). Es sind das Pflanzen, die mit Einrichtungen zum Fangen und Festhalten kleiner Tiere, Insekten vor allen Dingen, versehen sind, und die dann durch ausgeschiedene Enzyme die Beute soweit als möglich auflösen, verdauen und resorbieren. Alle diese Insektivoren besitzen Chlorophyll; es kann ihnen also gewiß nicht in erster Linie auf den Gewinn organisch gebundenen Kohlenstoffes ankommen. Es ist auch bekannt, daß sie ohne tierische Nahrung ganz gut gedeihen, doch wird durch Zufuhr einer nicht zu großen Menge animalischer Substanz eine entschiedene Förderung erzielt, die sich in vermehrter Frucht- und Samenproduktion kenntlich macht. Es ist sehr wahrscheinlich, aber keineswegs bewiesen, daß die Karnivorie auf den Gewinn von brauchbarem Stickstoff hinausläuft. Ob dieser an den Wohnorten der Insektivoren — sie wachsen vielfach in nährsalzarmem Torfmoor oder Wasser — nur der Quantität nach unzureichend ist, oder ob seine Qualität da nicht optimal ist, muß dahingestellt bleiben. Die Möglichkeit besteht zweifellos, daß organisch gebundener Stickstoff diesen Pflanzen besonders zuträglich ist. Daneben ist es freilich auch nicht ausgeschlossen, daß die Insektivoren nicht allein Stickstoff, sondern auch andere Nährsalze, vor allem Kali und Phosphorsäure, aus ihrer Beute gewinnen. Ob diese Nährsalze dann in organischer Bindung ausgenützt werden oder ob sie bei dem Verdauungsprozeß in anorganische Form übergeführt werden, wissen wir nicht. Im letzteren Falle würde der Nutzen der Insektivorie vor allem darin gesucht werden müssen, daß mehr Nährstoffe gewonnen werden, als der Boden bietet.
Vollkommen geklärt ist die Karnivorie auch heute noch nicht. Man hat darauf hingewiesen, daß die Insektivoren mehrfach ein sehr schwaches Wurzelsystem besitzen; das trifft aber für Nepenthes nicht zu. Eine Mykorrhiza (S. 226), die wahrscheinlich eine vermehrte Aufnahme von Bodensalzen bewirkt, fehlt den Insektivoren aber allgemein.
Die fleischfressenden Pflanzen scheinen dem Laien in ihrer Ernährungsweise weit von den anderen Pflanzen abzuweichen und mehr an die Tierwelt heranzukommen. Wie die Tiere, so nützen auch die Insektivoren feste Nahrung aus, die sie durch ausgeschiedene Enzyme verflüssigen, ehe sie sie in ihre Zellen aufnehmen. Daß bei den Tieren die „Verdauung“ der Nahrung im Magen sich vollzieht, bei den Insektivoren aber manchmal wenigstens in einem Gebilde, das dem Magen vergleichbar ist (Kannen usw.), macht die Ähnlichkeit der beiden Gruppen besonders groß. Es verdient aber hervorgehoben zu werden, daß in physiologischer Hinsicht manche Pilze und Bakterien den Tieren entschieden näher stehen. Denn sie können wie Tiere ihre gesamte Nahrung durch Verdauung fester organischer Körper gewinnen, während ja die Insektivoren wenigstens bezüglich des Kohlenstoffes autotroph sind.