ERSTER TEIL Allgemeine Botanik. (continued 4)
Reading edition
4. Verzweigung der Wurzel. Durch Verzweigungen, die immer wieder Wurzeln (gleichnamige Organe) sind, wird es der Wurzel ermöglicht, den Bodenraum nach allen Richtungen zu durchdringen und überall daraus Wasser und Bodensalze aufzunehmen.
Dichotome Verzweigung durch Gabelung der Vegetationskegel in je zwei Schenkel findet sich typisch bloß bei einigen Farnpflanzen (Lycopodinae).
Im übrigen verzweigen sich die Wurzeln seitlich (Fig. 155). Und zwar werden die Seitenwurzeln im Gegensatze zu den Seitenzweigen am Sprosse meist erst in einiger Entfernung vom Vegetationspunkte der Mutterwurzel, wo das Gewebe des Urmeristems bereits in Dauergewebe übergeht, im Innern des Gewebekörpers der Mutterwurzel, endogen (Fig. 162, 163), angelegt. Ihre Vegetationspunkte bilden sich nämlich bei den Pteridophyten aus der innersten Rindenschicht, bei den Phanerogamen dagegen aus der äußersten Zellschicht des Zentralzylinders, d. h. aus dem Perizykel der Mutterwurzel, indem hier Gruppen von Parenchymzellen sich zu teilen und in embryonalen Zustand zurückzukehren beginnen. Die Seitenwurzelanlagen müssen also immer die ganze Rinde ihrer Mutterwurzel durchbrechen. Demgemäß sind sie nicht selten an der Austrittsstelle von dem vorgestülpten Rande der durchbrochenen Rinde der Mutterwurzel wie von einem Kragen umgeben. Sie entstehen in dieser Weise zunächst spitzenwärts fortschreitend, also in akropetaler Reihenfolge. Sie pflegen auch in solcher, ihrem Alter entsprechenden Reihenfolge zu Wurzeln auszuwachsen. Später werden sie aber noch durch solche Seitenwurzeln vermehrt, die zwischen den bereits vorhandenen selbst an älteren Wurzelteilen hervorkommen.
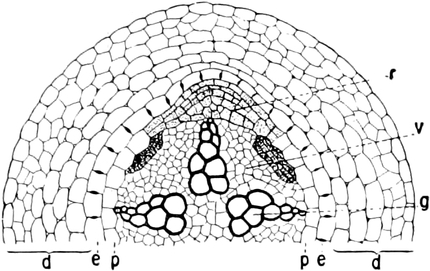
Fig. 162. Wurzelquerschnitt von Vicia Faba mit Seitenwurzelanlage r, etwas schematisiert, e Endodermis, p Perizykel, d Rinde, g Gefäßstrang, v Siebstrang des radialen (tetrarchen) Leitbündels. Vergr. 40.
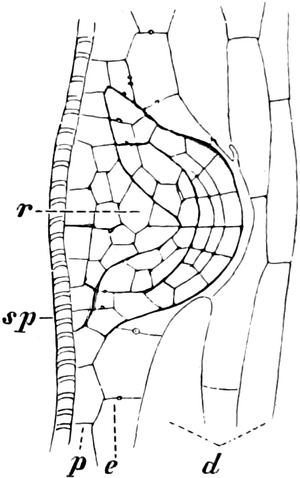
Fig. 163. Teil eines Längsschnittes durch eine Wurzel von Amarantus mit Anlage einer Seitenwurzel. e Endodermis, vor der Seitenwurzelanlage bereits resorbiert, d angrenzende Rinde, p Perizykel, sp Schraubentracheïde, r Seitenwurzelanlage. Vergr. etwa 200. Nach PH. VAN TIEGHEM.
Die Seitenwurzeln bilden immer gerade Reihen an der Mutterwurzel[86]. Diese Anordnung wird dadurch bedingt, daß die Nebenwurzeln entweder vor den längs verlaufenden Gefäßsträngen der Mutterwurzel (Fig. 162) oder vor den Leitparenchymplatten entstehen, die die Xylem- und Phloëmstränge trennen. Die Zahl der Seitenwurzelreihen ist also entweder gleich der Zahl der Xylemstränge oder doppelt so groß.
Die Seitenwurzeln haben den gleichen Bau wie die Hauptwurzel. Ihre Gefäß- und Siebstränge setzen sich an entsprechende Stränge der Mutterwurzel an.
5. Sproßbürtige Wurzeln. Außer an Wurzeln entstehen Wurzeln sehr oft auch an ungleichnamigen Organen, d. h. an Teilen des Sprosses, ebenfalls meist endogen aus Dauergewebe; bei den Farnen schon aus dem embryonalen Gewebe der Sproßvegetationspunkte. Man nennt solche Wurzeln je nach dem Orte ihrer Entstehung stengelbürtig oder blattbürtig.
Bei Sumpf- und Wasserpflanzen entspringen sie vielfach an den unteren Stengelknoten zwischen den Blättern. Ein bevorzugter Ort ihrer Entstehung, soweit die äußeren Bedingungen es zulassen, sind überhaupt Stengelknoten; sie können das mit den unteren Sproßpartien absterbende Hauptwurzelsystem ersetzen[87]. Besonders zahlreich sind sie an den Unterseiten der im Boden wachsenden Sproßteile (Rhizome, Fig. 143) oder kriechender Sprosse. Abgeschnittene und in feuchten Boden gesteckte Sprosse oder Sproßstücke bilden alsbald Wurzeln an ihrer Basis; solche brechen auch aus der Basis mancher entsprechend behandelter Blätter, so der Begonienblätter, hervor[88]. Die sproßbürtigen Wurzeln bezeichnet man wohl auch als Adventivwurzeln.
Kommen vorhandene Wurzelanlagen nicht zur Entwicklung, so nennt man sie schlafend. Solche ruhenden Anlagen von stengelbürtigen Wurzeln sind z. B. an jedem Weidenzweige vorhanden; ihre Weiterentwicklung läßt sich durch Feuchtigkeit und Verdunkelung leicht anregen.
6. Aussehen der Wurzelsysteme. Die Seitenwurzeln irgendeiner Ordnung wachsen in der Regel schwächer und sind dünner als die Mutterwurzeln, an denen sie entstanden sind. So wird das ganze Wurzelsystem typisch razemös. Die Nebenwurzeln letzter Ordnung bleiben gewöhnlich sehr kurz und haben nur eine begrenzte Lebensdauer; man nennt sie Saugwürzelchen.
Das Wurzelsystem erhält sein Gepräge, wie das Sproßsystem, weiter dadurch, daß Haupt- und Seitenzweige ganz verschiedene Lage zueinander und im Raume annehmen, und zwar durch verschiedene Art von Geotropismus (vgl. S. 299 ff.).
Viele Dikotylen (z. B. Lupine, Eiche) und Gymnospermen (Edeltanne) haben eine radiäre Hauptwurzel oder Pfahlwurzel, die schon als Keimwurzel den Hauptstamm nach unten fortsetzt und senkrecht nach unten, orthotrop, in die Erde wächst (Fig. 155). An ihr entstehen ebenfalls radiäre Seitenwurzeln I. Ordnung, die horizontal oder schräg, also plagiotrop, in das Erdreich eindringen. Die an ihnen entspringenden Seitenwurzeln II. Ordnung pflegen von denen I. Ordnung allseits ausstrahlend das Erdreich rings um diese zu durchwachsen, so daß also die Äste des Wurzelsystems den Boden nach allen Richtungen möglichst gleichmäßig durchziehen und bei weitergehender Verzweigung keinen Kubikzentimeter unausgenutzt lassen. Bei anderen Dikotylen und Gymnospermen kann das Wurzelsystem auch mehr oberflächlich bleiben (z. B. bei der Kartoffelpflanze und bei der Kiefer).
Den Monokotylen pflegt die Hauptwurzel zu fehlen, da sie schon am Keimling zugrunde geht. An ihre Stelle treten zahlreiche sproßbürtige Wurzeln aus der Stengelbasis, die senkrecht oder schräg oder horizontal in den Boden eindringen. Sie verzweigen sich monopodial und tragen Seitenwurzeln I. Ordnung, diese Seitenwurzeln II. Ordnung usw., die das Erdreich in allen möglichen Richtungen durchwachsen können. Hauptsächlich in horizontaler Richtung breitet sich das Wurzelsystem z. B. beim Getreide über immer größer werdende Areale aus.
Addiert man die Längen sämtlicher Wurzeln einer Pflanze, so bekommt man unerwartet hohe Werte; so kann die Gesamtwurzellänge bei einer Getreidepflanze Hunderte von Metern sein.
Eigenartig wird ein Teil der Wurzeln bei vielen Bäumen der tropischen Urwälder ausgebildet. Die außerordentlich hohen und dicken Stämme vieler solcher Bäume sind an der Basis durch mächtige, strebenähnliche Brettwurzeln oder durch stammartig verdickte, von den Ästen zur Erde herabgewachsene Luftwurzeln (Säulen- oder Stützwurzeln) vor dem Umfallen geschützt (z. B. bei vielen Ficus-Arten, vgl. Fig. 694).
c) Sekundäres Dickenwachstum des Kormus.
Wir sahen, daß die Sproß- und Wurzelteile, die in den Vegetationspunkten durch Vermehrung der embryonalen Zellen neu angelegt worden sind, durch Streckung fertig ausgebildet werden. Mit diesem Längenwachstum ist meist auch ein gewisses Dickenwachstum der Teile verbunden, das wie das Längenwachstum lediglich auf der bedeutenden Vergrößerung der meristematischen Zellen während ihrer Umbildung zu Dauerzellen, aber nicht auf Zellvermehrung beruht (primäres Dickenwachstum oder Erstarkung, Fig. 98, 100, 102, 115). Es ist freilich meist verhältnismäßig gering. An diese Dickenzunahme schließen sich in Sproßachsen und Wurzeln oft noch andere Wachstumsvorgänge an, denen wir nun unsere Aufmerksamkeit zuwenden müssen.
Je größer das Sproßsystem wird, um so besser vermag es der Beschattung durch andere Gewächse zu entgehen und um so mehr organische Substanz zu bilden. So sehen wir bei vielen Gewächsen aus einem zunächst kleinen, blattarmen Keimpflänzchen durch Wachstum, oft auch durch Verzweigung der Keimlingsachse, einen sehr blattreichen Kormus von riesigen, baumartigen Größenverhältnissen sich entwickeln. Die Größenzunahme des Sprosses im Luftraume stellt infolge Vermehrung der Blätter fortgesetzt höhere Anforderungen an die Wasserversorgung durch die Wurzel, der diese nur durch die Vergrößerung ihrer Oberfläche, meist verbunden mit Verzweigung, genügen kann; oft werden sogar noch sproßbürtige Wurzeln gebildet. Jede Vergrößerung des Wurzelsystems hat aber zur Vorbedingung, daß dazu hinreichende Mengen organischer Nährstoffe in den Blättern gebildet werden können. So stehen die Ausbildung der Blattkrone und des Wurzelsystems in engsten Wechselbeziehungen zueinander. Die Größenzunahme des Sproß- und Wurzelsystems hat ferner zur Voraussetzung, daß in den Stengeln und Wurzeln die genügende Anzahl von Leitungsbahnen einerseits für Wasser, andererseits für die organischen Stoffe vorhanden ist oder ausgebildet werden kann, und daß die Sproßachsen fest genug sind, um das größer und größer werdende Gewicht der Blatt- und Zweigmassen, auch bei heftigem Winde, zu tragen. Es bestehen also auch enge Beziehungen zwischen der Größe des Kormus und der Ausbildung der Leitungsbahnen in seinen Achsen und der Festigkeit der Sprosse.
Die Festigkeit muß um so größer sein, je größer die Pflanze wird und je länger sie lebt. Pflanzen oder Sproßsysteme, die nur verhältnismäßig kurze Zeit leben und nach Bildung der Fortpflanzungsorgane absterben, bleiben meist „krautartig“: Kräuter. Große Kormi, die viele Jahre leben und meist wiederholt fruktifizieren, erhöhen die Festigkeit ihrer Sproßachsen und Wurzeln meist durch Holzbildung. Solche Holzgewächse heißen Bäume[89], wenn sie einen Hauptstamm ausbilden (der Säulenfestigkeit besitzen muß); sonst nennt man sie Sträucher.
Die Lebensdauer der Gewächse[90] und die Beschaffenheit ihrer Sproßachsen wird in Pflanzenbeschreibungen und Katalogen gewöhnlich durch besondere Zeichen kenntlich gemacht. Kräuter sind: einjährige „annuelle“, zweijährige „bienne“ Pflanzen, ausdauernde „perennierende“ Stauden; Holzgewächse: Sträucher und Bäume. Einen besonderen Typus des Baumes finden wir in den säulenförmigen, meist unverzweigten Stämmen der Palmen und Farnbäume, denen mit dem sekundären Dickenwachstum ein echtes Holzgewebe fehlt.
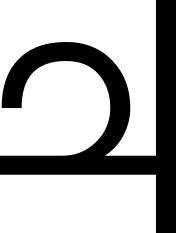
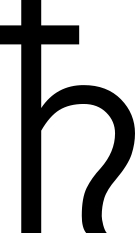
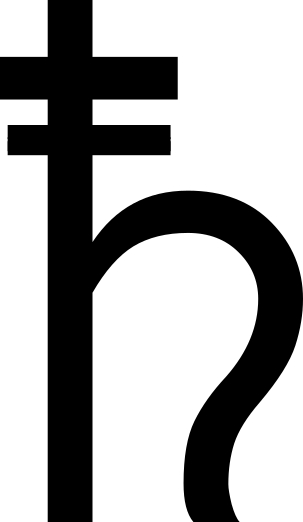
Dem Bedürfnisse nach der nötigen Anzahl von Leitungsbahnen und der erforderlichen Festigung wird bei den Kormi der Sproßpflanzen in verschiedener Weise Rechnung getragen: Erstens nämlich gibt es Pflanzen, bei denen die Hauptachse des Keimlings und die etwa entstehenden Seitenzweige schon, ehe sie in die Länge wachsen, vor oder während ihrer Erstarkung, also primär, so verdickt und mit so viel Leitungs- und Festigungsgewebe ausgestattet werden, daß sie bei ihrem späteren Längenwachstum der ganzen künftigen Größenzunahme des Kormus genügen; die Keimwurzel bleibt bei ihnen aber dünn, stirbt meist frühzeitig ab und wird durch sproßbürtige Wurzeln aus der Basis oder auch aus höheren Zonen der Keimlingssproßachse ersetzt. Zweitens gibt es solche, bei denen zunächst lange, fadenförmig dünne Stengel und Wurzeln mit wenigen Leitungsbahnen (und wenigen mechanischen Elementen) entwickelt werden. Die Wasserversorgung der Blätter und umgekehrt die Nahrungsversorgung des Wurzelsystems und hiermit die Größenzunahme des Kormus würden bei ihnen meist sehr bald eine Grenze in der geringen Zahl der Leitungsbahnen des Keimstengels und der Keimwurzel finden, wenn nicht nach Umwandlung der Keimachse in Dauergewebe, entsprechend den Bedürfnissen des heranwachsenden Kormus, später für Vermehrung der Leitungsbahnen (und des Festigungsgewebes) im Wurzelsysteme und im Keimstengel gesorgt würde. Das geschieht aber durch nachträgliche Zellvermehrung, Bildung sekundärer Gewebe (des Sekundärzuwachses), womit ein nachträgliches, sekundäres Dickenwachstum der Stengel und Wurzeln verbunden ist. Sekundäre Gewebe nennt man solche Gewebe, die durch Tätigkeit sekundärer Meristeme, der Kambien (vgl. S. 40), den primären Geweben hinzugefügt werden oder die primären Gewebe ersetzen. Sekundäres Dickenwachstum findet sich sowohl bei krautigen als auch bei Holzpflanzen.
Zum ersten Typus[91] gehören die meisten krautigen Pteridophyten und Monokotylen, ja selbst fast alle ihre stammbildenden Formen (Baumfarne, Palmen, Pandanaceen, bestimmte Liliifloren). Bei den stammbildenden Monokotylen z. B. bleibt der Keimstengel nach der Keimung zunächst lange Zeit sehr kurz. Das Urmeristem seines flachen Vegetationspunktes wächst an der Peripherie des Zentralzylinders durch Zellvermehrung stark in die Breite. Infolgedessen erhält der Vegetationspunkt und die Sproßachse des Keimlings, aus der der Stamm hervorgehen soll, von vornherein einen sehr großen Durchmesser.
Bei solchen Formen, wie z. B. bei den Palmen und Pandanaceen, kann der Stamm auch nach Ausbildung der Dauergewebe durch Erweiterung der vorhandenen Dauergewebszellen noch längere Zeit ein wenig weiter erstarken. Hauptsächlich die Zellen der Sklerenchymfaserstränge, die die Siebteile der Leitbündel begleiten, nehmen dabei an Weite zu, wodurch die ganzen Stränge mächtiger werden. Hier und da freilich kann die Dickenzunahme von Teilungen der Parenchymzellen begleitet sein (manche Palmen).
Zum zweiten Typus[92] gehören die meisten krautigen und holzbildenden Gymnospermen, Dikotylen und einige baumförmige Liliifloren. Bei ihnen folgt also auf das primäre Dickenwachstum (die Erstarkung) der Stengel und Wurzeln durch Zellvergrößerung meist ein sekundäres durch Zellvermehrung in einer besonderen Meristemzone, dem Verdickungsring.
Einjährige, kletternde und windende Pflanzen beginnen oft erst in ziemlich alten Internodien, lange nach Beendigung der Erstarkung, sekundär in die Dicke zu wachsen. An den Zweigen der Bäume fängt das sekundäre Dickenwachstum dagegen meist schon an, ehe die primären Dauergewebe ausgebildet worden sind.
Sekundäres Dickenwachstum trat zuerst bei gewissen, jetzt nur aus fossilen Überresten bekannten Pteridophyten auf; aber erst bei den Gymnospermen und Dikotylen gelangte es zu allgemeiner Verbreitung.
Sekundäres Dickenwachstum monokotyler Stämme. Es gibt auch einige baumartige Liliifloren (Dracaena, Cordyline, Yucca, Aloë), deren Achsen befähigt sind, mit einem sekundären Meristem sekundär in die Dicke zu wachsen. Dieses Meristem entsteht außerhalb der primären Leitbündel, die im Zentralzylinder nach Monokotylenart zerstreut sind, und zwar in der anschließenden Rinde, aus einer im Querschnitte ringförmigen Zone von fertigen Rindenzellen, die sich wieder zu teilen beginnen (bei den Dracaenen meist erst in größerer Entfernung vom Stammscheitel, sonst schon in seiner unmittelbaren Nähe). Es bildet einen Zylindermantel aus mehreren Schichten prismenförmiger, lückenlos verbundener, embryonaler Zellen, die durch tangentiale Wände längere Zeit nur Zellen nach innen, später auch einige nach außen abgeben. Das weitere Schicksal dieser so durch Teilung entstandenen embryonalen Zellen ist ein völlig anderes als bei den Gymnospermen und Dikotylen: Die von dem Meristem nach außen gebildeten Zellen werden nämlich zu sekundären Rindenzellen; die nach innen abgegebenen aber teils zu vollständigen konzentrischen Leitbündeln mit Außenxylem, teils zu Parenchym, dessen Zellwände sich stark verdicken und verholzen (Fig. 164).
Die Meristemzellen haben im Querschnitt und im radialen Längsschnitt rechteckige, im tangentialen Längsschnitt polygonale Gestalt; es sind also Prismen mit tangential gerichteter polygonaler Grundfläche (vgl. Fig. 167 A II). Solange das Meristem einseitig tätig ist, werden seine Initialen aus dem nach außen angrenzenden Dauergewebe der Rinde ergänzt. Sobald es beiderseitig tätig wird, bleibt dauernd eine Zellschicht als Initialschicht erhalten.
Ein echtes sekundäres Dickenwachstum monokotyler Wurzeln ist nur für die Gattung Dracaena bekannt. Der Kambiumring, der es besorgt, nimmt in der Wurzelrinde seinen Ursprung und zwar in den inneren Teilen, die an die Endodermis grenzen.
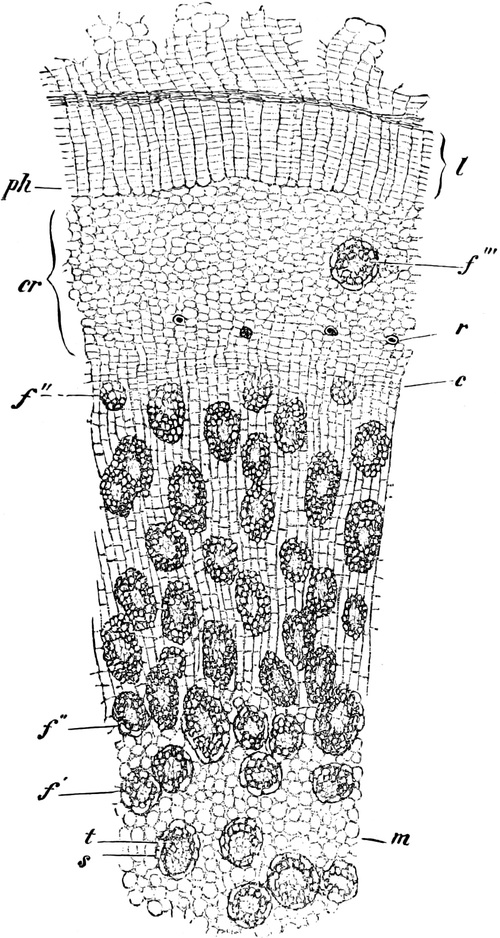
Fig. 164. Cordyline (Dracaena) rubra. Querschnitt durch den Stamm. f Leitbündel, und zwar f′ primäre, f″ sekundäre, f‴ ein aus einem Blatte kommendes, noch innerhalb der Rinde befindliches Bündel, m parenchymatisches Grundgewebe, s Leitbündelscheide, t Tracheïden, c Verdickungsring (Kambium), cr Rinde, ph Korkkambium, l Kork, r Rhaphidenbündel. Vergr. 30. Nach STRASBURGER.
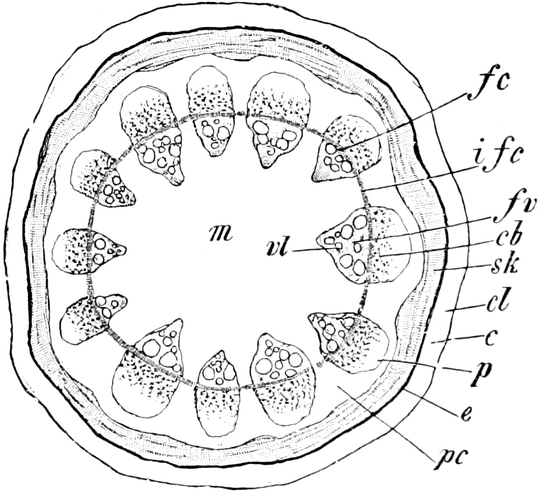
Fig. 165. Querschnitt durch einen 5 mm dicken Zweig von Aristolochia Sipho. m Mark, fv Leitbündel, und zwar vl Gefäßteil, cb Siebteil, fc Faszikularkambium, ifc Interfaszikularkambium, p Phloëmparenchym an der Außenseite des Siebteils, pc Perizykel, sk Sklerenchymring, e Stärkescheide, c Rinde, in dieser cl Kollenchym. Vergr. 9. Nach STRASBURGER.
Sekundäres Dickenwachstum der Gymnospermen und Dikotylen. 1. Bildung, Bau und Tätigkeit des Kambiums in den Stengeln. In den offenen Leitbündeln der Gymnospermen und der Dikotylen kann die sekundäre Gewebebildung an die Fertigstellung der primären Gewebe anschließen oder schon früher beginnen. Nur der erstere Fall sei hier besprochen, obwohl er keineswegs häufig ist. Die zwischen den Gefäßteilen und Siebteilen der offenen Bündel vorhandenen Reste von Urmeristem werden dabei zu Kambien, indem sie sich von neuem lebhaft zu teilen beginnen. Die Leitbündel sind meist im Kreise angeordnet. Nachdem die Kambiumtätigkeit innerhalb der Bündel begonnen hat, bildet sich Kambium auch in den Markstrahlen. Eine Zone von Dauerzellen nämlich, die die Kambien dar angrenzenden Leitbündel verbinden, beginnt sich tangential zu teilen. Dieses interfaszikulare Kambium ergänzt so die innerhalb der Bündel gelegenen faszikularen Kambien zu einem vollen Zylindermantel von Meristemgewebe. Seine Zellen, die in radialer Richtung wachsen, teilen sich durch tangentiale und durch quere Scheidewände.
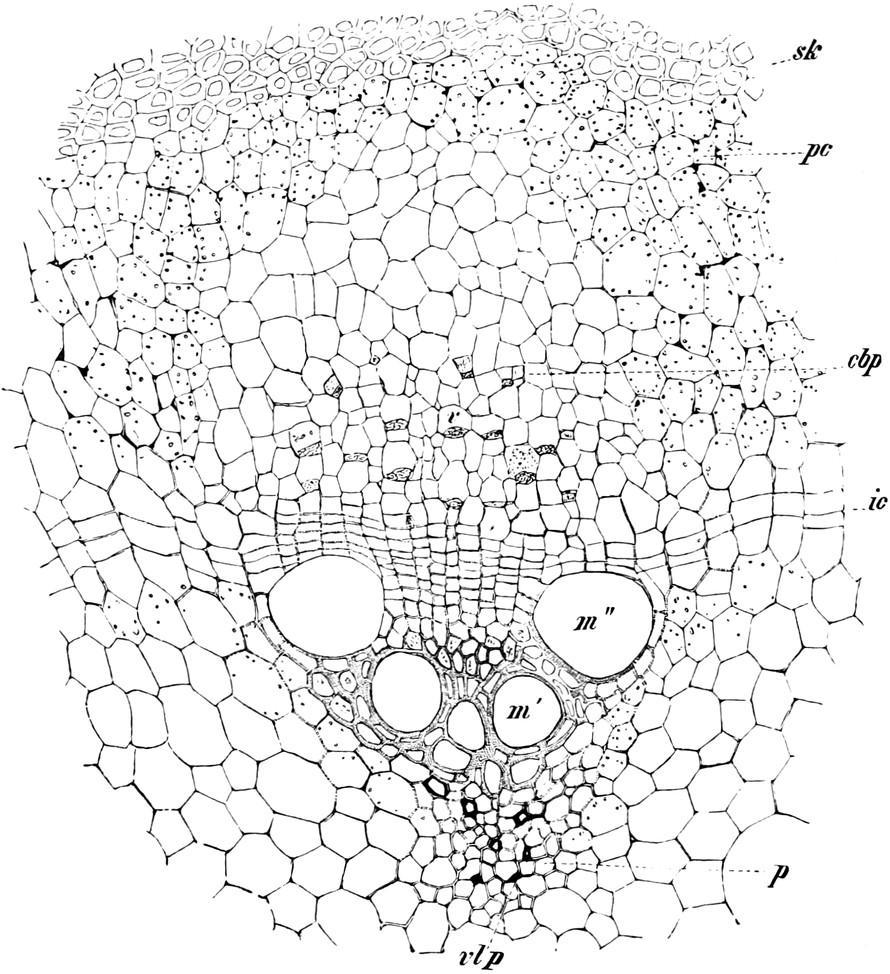
Fig. 166. Querschnitt durch ein Leitbündel eines Zweiges von Aristolochia Sipho im ersten Jahre seiner Entwicklung, nach begonnener Kambiumtätigkeit. p Xylemparenchym, an dem Innenrande des Gefäßteils, vlp Xylemprimanen, m′ und m″ Tüpfeltracheen, ic Interfaszikularkambium, sich in das Faszikularkambium fortsetzend, v Siebröhren, cbp Siebprimanen, pc Gewebe des Perizykels, sk innerer Teil des Ringes aus Sklerenchymfasern. Vergr. 130. Nach STRASBURGER.
Die Fig. 165 und 166 stellen den Vorgang der Kambiumbildung für den Stengelquerschnitt von Aristolochia Sipho dar, wo er sich in möglichst einfacher und übersichtlicher Weise vollzieht. Die Fig. 166 gibt ein einziges Leitbündel nebst dem angrenzenden Interfaszikularkambium aus der Fig. 165 bei stärkerer Vergrößerung wieder. In diesem Bündel ist die Kambiumtätigkeit bereits in vollem Gange. Besonders fallen die in Ausbildung begriffenen sekundären Gefäße (m″) auf. Innerhalb der Markstrahlen sind die Parenchymzellen, die dem Interfaszikularkambium den Ursprung gaben, noch deutlich zu erkennen.
Die meristematischen Kambiumzellen des Verdickungsringes, die lückenlos verbunden sind und radiale Reihen bilden, pflegen die Gestalt langgestreckter, in tangentialer Richtung mehr oder weniger abgeplatteter Prismen zu haben mit beiderseits meißelförmig zugeschärften Enden, deren scharfe Kanten radial gestellt sind, so daß die Zellform auf Tangential-, Radial- und Querschnitten ganz verschieden erscheint (Fig. 167). Die tangentialen Wände, die die polygonalen oder rhombischen Grundflächen der Prismen bilden, sind dünn, die radialen, die senkrecht auf den Grundflächen stehen, dagegen ziemlich dick und oft getüpfelt. In dem mehrschichtigen Kambiummantel ist eine mittlere Zellschicht, die Initialschicht. Ihre Zellelemente, die in radialer Richtung wachsen, bleiben dauernd meristematisch und geben durch fortgesetzte Teilungen mittels tangentialer Scheidewände Tochterzellen (Gewebemutterzellen) in radialer Richtung nach außen, in viel größerer Zahl aber nach innen hin ab. Diese Tochterzellen werden ihrerseits, meist nach weiteren tangentialen Teilungen und nach oft starkem Längen- und Dickenwachstum (Fig. 172), allmählich zu sekundären Dauerzellen, deren Formen vielfach gar nicht mehr den embryonalen Kambiumzellen ähnlich sind.
Dadurch, daß das Kambium nach innen Zellen abgibt, wird es mit der Dickenzunahme des Stammes selbst immer weiter nach außen geschoben; dementsprechend muß sich der Umfang des Kambiummantels fortgesetzt vergrößern. Das ist nur möglich durch Wachstum und Vermehrung der Zellen in tangentialer Richtung. Auf Querschnitten durch das Kambium sieht es so aus, als käme diese Vermehrung durch gelegentliche radiale Teilungswände zustande. KLINKEN[93] und NEEFF haben uns aber darüber belehrt, daß solche Teilungen nicht vorkommen; soll die Zellenzahl tangential vermehrt werden, so teilt sich vielmehr eine Kambiuminitialzelle quer, worauf die Enden der Tochterzellen durch gleitendes Wachstum tangential aneinander vorbei wachsen.
Alles durch die Kambiumtätigkeit nach innen erzeugte Dauergewebe, das meist hart und fest ist und aus mehr oder weniger verholzten Zellen besteht, wird als Holz, alles nach außen gebildete Gewebe dagegen, das aus meist unverholzten Zellen besteht, als Bast bezeichnet.
Die vom Kambium nach außen abgegebenen Gewebe heißen wohl auch sekundäre Rinde.
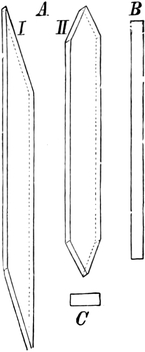
Fig. 167. Schematische Darstellung der Form der Kambiumzellen. A I und II die beiden vorkommenden Formen körperlich, die tangentiale (Breit-)Seite zeigend; B Radialschnitt; C Querschnitt. Nach ROTHERT.
Das sekundäre Gewebe, das vom faszikularen Kambium nach innen gebildet wird, gleicht dem der Xylemteile, das nach außen gebildete dem der Siebteile der primären Leitbündel. Durch die Tätigkeit des Interfaszikularkambiums werden die Markstrahlen dauernd auf der Holz- und der Bastseite verlängert, allerdings meist nicht in ihrer ganzen Breite als Markstrahlen; denn der größere Teil auch des interfaszikularen Kambiums bildet nach innen und nach außen in der Regel ähnliche Gewebe wie das faszikulare. Da also in den Markstrahlen nur an beschränkten, voneinander isolierten Stellen radiale Stränge von Markstrahlgewebe gebildet werden, indem die Kambiumzellen eben nur hier nach außen und innen Markstrahldauerzellen liefern, werden die zunächst plattenförmigen Markstrahlen in zahlreiche neben- und übereinander liegende kleinere, bandförmige, von spindelförmigem Querschnitt zerlegt (Fig. 168), die das Mark mit der Rinde verbinden und als primäre Markstrahlen des Holzes und des Bastes gelten. Bei zunehmender Dicke des Holz- und Bastringes beginnen aber auch einzelne Streifen des Faszikularkambiums, Markstrahlgewebe zu erzeugen. So werden die sekundären Markstrahlen gebildet, die blind in dem Holze und Baste endigen und um so weniger tief in beide hineinreichen, je später sie angelegt wurden (Fig. 177).
Die Kambiumzellen, die Markstrahlzellen bilden, stehen den anderen an Länge nach und haben auch weniger steile, ja zum Teil selbst horizontale Endwände, weil die Kambiumzellen vor der Einschaltung neuer Markstrahlen quer- oder schräggeteilt werden.
Man kann nach dem primären Bau der Stengel, der Entstehung des Kambiums und der Art seiner Tätigkeit im wesentlichen drei Typen unterscheiden[94]: 1. Im Stengel entsteht zunächst ein Ring von kollateralen Leitbündeln, die durch breite Markstrahlplatten aus Dauergewebe voneinander getrennt sind; die Markstrahlen behalten auch während des sekundären Dickenwachstums im Stengel ungefähr ihre Breite, indem das interfaszikulare Kambium fast nur Markstrahlgewebe erzeugt, so bei vielen krautigen Pflanzen, unter verholzten fast nur bei Lianen. Bei den Kräutern, bei denen der innere Teil der Markstrahlen zwischen den primären Gefäßsträngen aus Sklerenchym besteht (vgl. S. 82), bildet das interfaszikulare Kambium in den Strahlen nach innen ebenfalls solches Gewebe. 2. Im Stengel entsteht wie bei 1. ein Kranz kollateraler Blattspurbündel, die durch sehr breite Markstrahlen voneinander getrennt sind. Noch ehe das primäre Dickenwachstum beendigt ist, entstehen aus dem zum Teil noch embryonalen Markstrahlgewebe, das nun kambialen Charakter annimmt, in jedem Markstrahle ein bis mehrere kleinere, tangential netzartig verbundene stammeigene Zwischenbündelchen, die den Raum des Markstrahles fast völlig ausfüllen und die in den Maschen zwischen sich sehr schmale bandartige primäre Markstrahlen mit spindelförmigem Querschnitt lassen (Fig. 168) (so bei vielen Kräutern und Holzgewächsen). 3. Im Stengel entsteht bei der Umwandlung des primären Meristemgewebes zu Dauergewebe von vornherein nicht ein Kranz kollateraler Bündel, sondern ein ringförmiges Bündelrohr, das man geradezu als konzentrisches Bündel mit Innenxylem und mit zentralem Marke bezeichnen muß. Dieses Rohr hat eine Schicht von embryonalem Gewebe zwischen Phloëm und Xylem, das spätere Kambium, und ist von sehr schmalen, spindelförmigen primären Markstrahlen durchsetzt oder kann auch alle primären Markstrahlen entbehren (so bei vielen Bäumen).
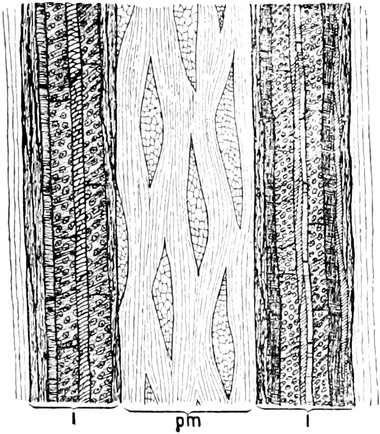
Fig. 168. Auflösung eines primären Markstrahles in viele kleine nach Beginn des sekundären Dickenwachstums. Tangentialer Längsschnitt schematisch. l, l Benachbarte primäre Leitbündel; pm primärer Markstrahl, durch die Tätigkeit des interfaszikularen Kambiums zerlegt in viele kleine spindelförmige Markstrahlen und in netzartig verbundene sekundäre Leitbündel.
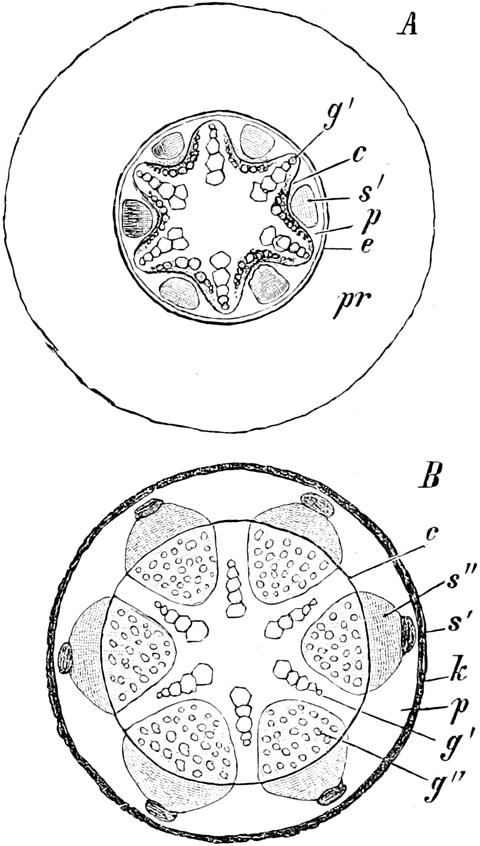
Fig. 169. Schematische Darstellung des Dickenwachstums einer dikotylen Wurzel. In A bedeutet pr Rinde, e Endodermis. In A und B sind c Kambiumring, g′ Gefäßstrang, s′ Siebstrang, p Perizykel. In B bedeuten außerdem g″ Holz, s″ Bast, k Periderm (vgl. S. 138). Nach STRASBURGER.
Die primären Gefäßteile ragen im sekundär verdickten Stengel als Vorsprünge in das Mark; man nennt sie in ihrer Gesamtheit Markkrone.
2. Bildung und Tätigkeit des Kambiums in der Wurzel. Wie wir gesehen haben (Fig. 157, 158), wechseln im Zentralzylinder der Wurzeln die Gefäß- und Siebstränge miteinander ab; sie sind durch Parenchymplatten voneinander getrennt. Beginnt nun eine solche Gymnospermen- oder Dikotylenwurzel sekundär in die Dicke zu wachsen, so bilden sich in diesen Parenchymplatten parallel zu ihren Flächen, also zwischen den Gefäß- und Siebsträngen, durch Teilung der Zellen Kambiumstreifen aus, die nach innen Holz, nach außen Bast erzeugen. Die Ränder der Kambiumstreifen treffen im Perizykel vor den Gefäßsträngen zusammen; hier werden die Perizykelzellen ebenfalls zu Kambiumzellen: Nun ist ein vollständiger Kambiummantel mit welligem Querschnitt da, der, wie beim Stengel, im ganzen Umkreis seine Tätigkeit ausüben kann (vgl. die dunkle Linie der schematischen Fig. 169 A). Die Einbuchtungen gleichen sich bald aus, so daß der Mantel kreisförmigen Querschnitt erhält (Fig. 169 B). Dem Holzkörper und dem Baste fehlen die eigentlichen primären Markstrahlen, doch werden wie im Stengel sekundäre erzeugt; bei manchen Pflanzen besonders große, plattenförmige vor den primären Gefäßsträngen (vgl. Fig. 169 B). Der Querschnitt durch eine Wurzel, die jahrelang in die Dicke gewachsen ist, läßt sich von einem Stammquerschnitt ohne eingehendere Untersuchung nicht unterscheiden; erst durch solche kann man inmitten der Wurzel das Vorhandensein ihrer eigenartigen primären Gefäßstränge feststellen.
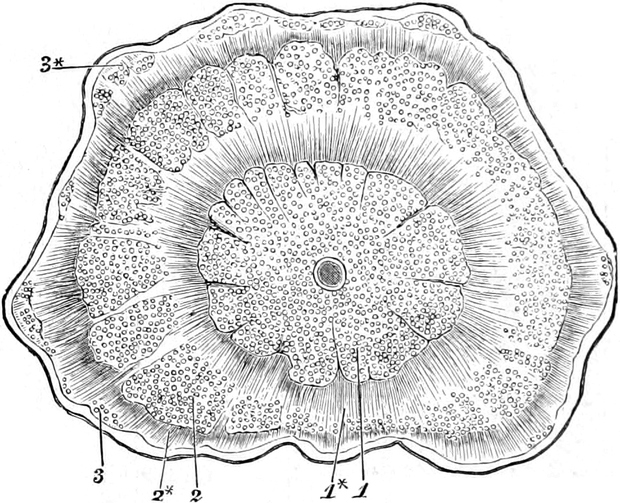
Fig. 170. Querschnitt durch einen Stamm von Mucuna altissima. 1, 2, 3 aufeinanderfolgende Holzkörper. 1*, 2*, 3* aufeinanderfolgende Bastzonen. 3 und 3* innerhalb des Perizykels in Bildung begriffen. 3⁄4 nat. Gr. Nach SCHENCK.
Wiederholte Kambiumbildung in Stämmen und Wurzeln. Außer den allgemein verbreiteten Vorgängen des sekundären Dickenwachstums kommen in den Stämmen und in den Wurzeln bei Gymnospermen und Dikotylen auch andere vor, die als Anomalien dem normalen Typus gegenübergestellt werden. Sie kennzeichnen sich durch abweichende Verteilung und Tätigkeit der Kambien.
Bei einigen Cycadeen und bestimmten Gnetum-Arten unter den Gymnospermen, bei Chenopodiaceen, Amarantaceen, Nyctagineen, Phytolaccaceen und noch anderen Familien unter den Dikotylen hört der erste, in gewohnter Weise entstandene Kambiumring nach längerer oder kürzerer Zeit zu funktionieren auf. Es bildet sich ein neuer Kambiummantel meist im Perizykel, also außerhalb der Bastzone, oder in einem vom ersten Kambiummantel abstammenden Gewebe. Dieses Kambium erzeugt wiederum nach innen Holz, nach außen Bast, beides mit Markstrahlen. Alsdann erlischt es; wieder ein neues, außerhalb des neuen Bastmantels entstehendes Kambium tritt an seine Stelle. Der Vorgang wiederholt sich und führt zur Bildung konzentrischer Holz-Bastzonen. Solche treten uns z. B. an dem Fig. 170 dargestellten Stammquerschnitt einer zu den Papilionaceen gehörenden Liane, der Mucuna altissima, als Ringe deutlich entgegen. Konzentrische Holz-Bastmäntel findet man auch an manchen fleischigen Wurzeln, die zwei oder mehr Vegetationsperioden ausdauern. So bei der Runkelrübe (Beta vulgaris), wo man sie schon mit dem bloßen Auge auf Querschnitten sehen kann. Sie entstehen wie eben beschrieben; nur herrschen in diesen Zuwachszonen, ebenso wie im typischen sekundären Zuwachs anderer fleischiger Wurzeln, die Parenchyme vor, die vermehrt werden, um der Speicherung von Reservestoffen zu dienen.
3. Das Holz. A. Gewebearten und deren Funktionen. Das Holz ist ein Gewebekörper von verwickeltem Bau. Es setzt sich bei den Dikotylen meist aus drei verschiedenen Gewebearten mit mehr oder weniger verholzten Membranen zusammen: 1. aus längsverlaufenden Strängen toter Gefäße (Fig. 171 g, tg), 2. aus längsverlaufenden Strängen meist toter Sklerenchymfasern: Holzfasern (h) und 3. aus längs- und in den Markstrahlen auch radialverlaufenden Strängen von Speicherparenchymzellen (hp): Holzparenchym und Markstrahlparenchym. Dementsprechend dient das Holz 1. zunächst wie die primären Gefäßteile der Leitbündel der Wasserleitung, außerdem aber auch 2. der Festigung der Stämme und der Wurzeln gegen Druck und Biegungen und 3. zur Aufspeicherung organischer Substanzen. Die Eigenschaften, die das Holz als Baumaterial für uns so wertvoll machen, werden aus seiner Festigungsfunktion verständlich.
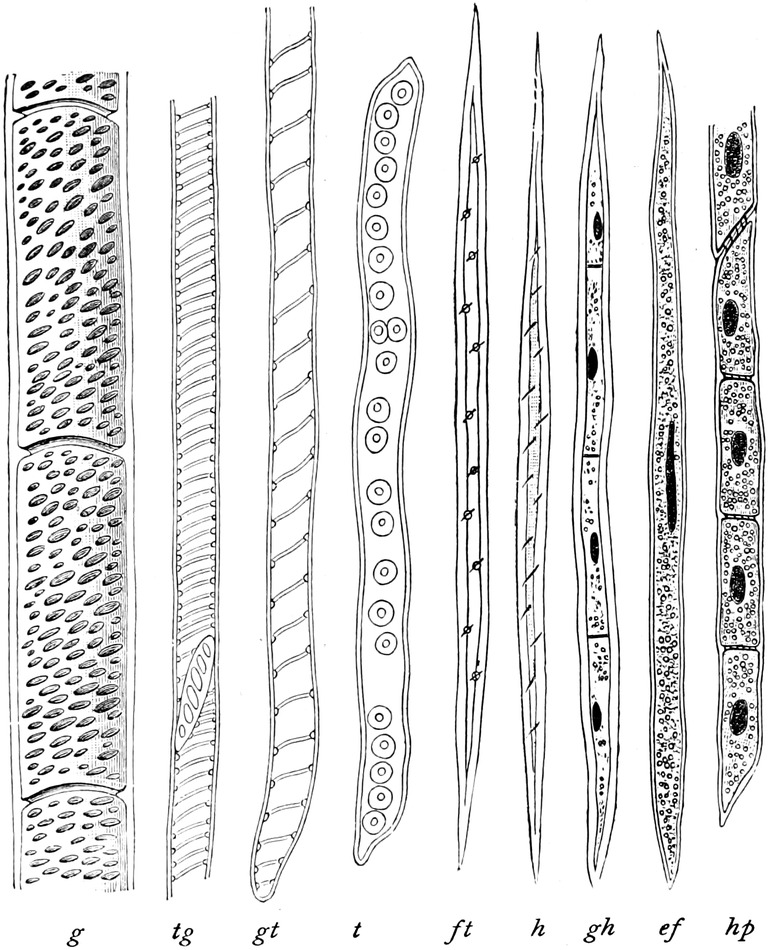
Fig. 171. Tracheen, Tracheïden, Holzfasern und Holzparenchym der Dikotylen nebst ihren Übergangsformen, schematisch. Erklärung im Text. Nach STRASBURGER. (Verändert.)
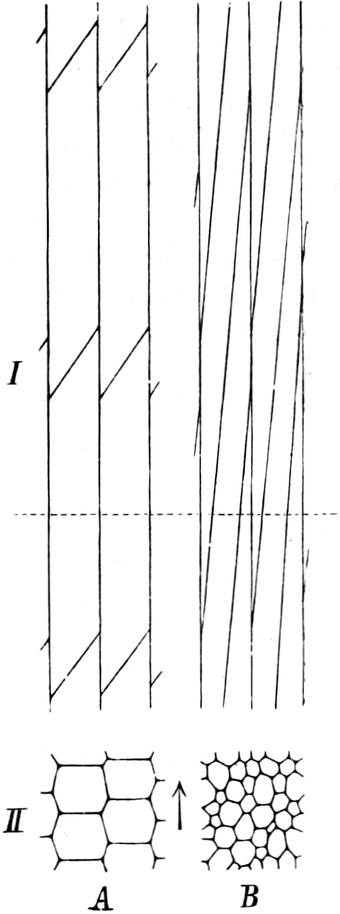
Fig. 172. Schematische Darstellung des gleitenden Wachstums; für Holzfasern. A I und II jugendlicher Zustand der Zellen, B I und II nach dem gleitenden Wachstum ausgewachsen. I Im tangentialen Längsschnitte, II im Querschnitte in der punktierten Linie von I. Nach ROTHERT.
Die Zellarten, aus denen das Holz sich aufbaut, lassen sich am leichtesten untersuchen, wenn man das Holz mit SCHULZEschem Gemisch mazeriert (vgl. S. 35).
Die Gefäße sind Tüpfel-, seltener Netzgefäße, und zwar in der Regel teils sehr weite, kurzgliedrige und enge, mehr oder weniger langgliedrige Tracheen (Fig. 171 g, tg), teils enge, langgestreckte Tracheïden, die außer der Wasserleitung zugleich zur Festigung des Stammes dienen. Die Holzfasern (h) sind meist sehr eng und sehr langgestreckt, beiderseits nadelförmig zugespitzt und dickwandig mit schrägen, schmalen, spaltenförmigen Tüpfeln. Die Speicherparenchymzellen (hp) endlich sind rechteckig prismatisch oder spindelförmig, in Richtung des Strangverlaufs in der Regel gestreckt, dünn- oder dickwandig mit meist kleinen, rundlichen, einfachen Tüpfeln und sind reich an Reservestoffen (Stärke, Zucker oder Öl). Interzellularen kommen nur in den Parenchymsträngen vor.
Bei zahlreichen Leguminosen, bei Weiden, Pappeln, Ficus-Arten kommen im Holz als wasserleitende Elemente nur Tracheen vor.
Die Tracheïden und Holzfasern sind wesentlich länger als die Kambiumzellen, aus denen sie hervorgehen, oft bis über 1 mm lang. Diese größere Länge erreichen sie, ebenso wie die weiten Tracheen ihren Durchmesser, durch gleitendes Wachstum (S. 40 und Fig. 172). Bei der Bildung von Holzparenchym werden die Gewebemutterzellen des Kambiums wiederholt quer geteilt. Dieses Parenchym besteht also (vgl. Fig. 171 gh, hp) aus Zellreihen, denen man ihre Herkunft aus Kambiumzellen ansieht, da sie oben und unten mit zugespitzten Elementen endigen.
Die Scheidewände zwischen den Holz- oder Markstrahlparenchymzellen und den Gefäßen sind einseitig behöft getüpfelt, soweit Tüpfel vorhanden sind: die meist großen Tüpfel sind innerhalb der lebenden Zellen ohne Hof, behöft dagegen in den Gefäßen, zudem im Gegensatze zu den typischen beiderseits behöften Tüpfeln stets ohne Tori in den Schließhäuten. Die Scheidewände zwischen den Gefäßen und den Holzfasern und die zwischen den Holzfasern und den Parenchymzellen sind dagegen meist gar nicht getüpfelt.
Bei den Hölzern, die aus Gefäßen, Holzfasern und Parenchymzellen sich aufbauen, kann man nicht selten alle Übergänge zwischen solchen typisch ausgebildeten Elementen beobachten; dementsprechend gehen ihre Funktionen ineinander über. Neben mehr oder weniger weiten Hoftüpfeltracheen (g) kommen enge Tracheen vor. Diese (Fig. 171 tg) leiten über zu den Tracheïden (Fig. 171 gt, t). Schmale, stark zugespitzte Tracheïden (Fasertracheïden ft), die hauptsächlich der mechanischen Festigung dienen mögen, bilden einen Übergang zu den Holzfasern (h). Wenig verdickte Holzfasern, die ihren lebenden Inhalt behalten (die sog. Ersatzfasern ef), ohne oder mit Querwänden (gh), vermitteln den Übergang zu den Holzparenchymzellen (hp). Phylogenetisch sollen sich aber nach STRASBURGER[68] die Fasertracheïden nur von den Gefäßen, die Holzfasern dagegen nur durch Umbildung von Holzparenchymzellen ableiten lassen.
Bei den Gymnospermen kommen im Holze außer wenig Holz- und viel Markstrahlparenchym nur noch Tracheïden mit typischen Hoftüpfeln vor. Hier ist also die Arbeitsteilung noch nicht so weit fortgeschritten; die Festigung wird noch von den gleichen Elementen besorgt, die auch der Wasserleitung dienen. Ebenso ist es bei der Magnoliaceen-Gattung Drimys unter den Dikotylen.
B. Anordnung der Gewebearten im Holze. Bei den Gymnospermen (Fig. 173–175) hat das Holz der Stämme und Wurzeln also einen verhältnismäßig noch einfachen Bau. Die Tracheïden sind entsprechend ihrer Entstehung (Fig. 173 B) in regelmäßigen radialen Reihen angeordnet (Fig. 173 A), da sie nur in radialer Richtung, aber so gut wie gar nicht in tangentialer und longitudinaler wachsen; sie haben infolgedessen ähnliche Gestalt wie die Kambiumzellen (Fig. 167) und besitzen oft nur in ihren radialen Wänden große runde Hoftüpfel, so daß man diese vor allem in radialen Schnitten von der Fläche zu sehen bekommt (Fig. 70 B, 71 A).
Holzparenchym ist in den meisten Gymnospermenhölzern nur sehr spärlich vorhanden. Bei den Kiefern, Fichten und Lärchen umgibt es ausschließlich die schizogenen Harzkanäle, die das Holz zwischen den Tracheïden durchziehen (Fig. 173 Ah, 177 h) und mit radial in einzelnen breiten Markstrahlen verlaufenden in Verbindung stehen. Daher können große Harzmengen aus einem verwundeten Kiefern- oder Fichtenstamme ausfließen. Bei den anderen Koniferen ist die Bildung des Holzparenchyms auf einfache Zellreihen beschränkt, deren Zellräume sich weiterhin mit Harz füllen.
Außer den Tracheïden findet man in den Gymnospermenhölzern, wie gesagt, fast ausschließlich Markstrahlparenchym, das in Form sehr zahlreicher, radial verlaufender, bandförmiger und meist nur eine Zellschicht breiter Markstrahlen (Fig. 173 m, 175 sm, tm, 177 ms) das Holz durchsetzt. Eine jede Holztracheïde grenzt in ihrem Längsverlaufe an einen oder auch an mehrere dieser Markstrahlen an. Die Markstrahlzellen sind radial gestreckt, stärkereich, werden von Interzellularen begleitet (Fig. 175 i) und dienen dazu, die in den Blättern gebildeten und im Baste abwärts geleiteten Assimilate in radialer Richtung dem Holz des Stammes und der Wurzeln zuzuführen und hier zu speichern, umgekehrt Wasser aus dem Holzkörper nach außen zu leiten. Diese Aufgaben können die Markstrahlen erfüllen, da sie, wie wir sahen, mit ihren Enden gleicherweise in den Bast und in das Holz eindringen (Fig. 173 B, 174, 177). Die Interzellularen münden in das Interzellularsystem der Rinde und sichern den lebenden Zellen im Holze den für ihre Lebensvorgänge notwendigen Gasaustausch mit der Atmosphäre.
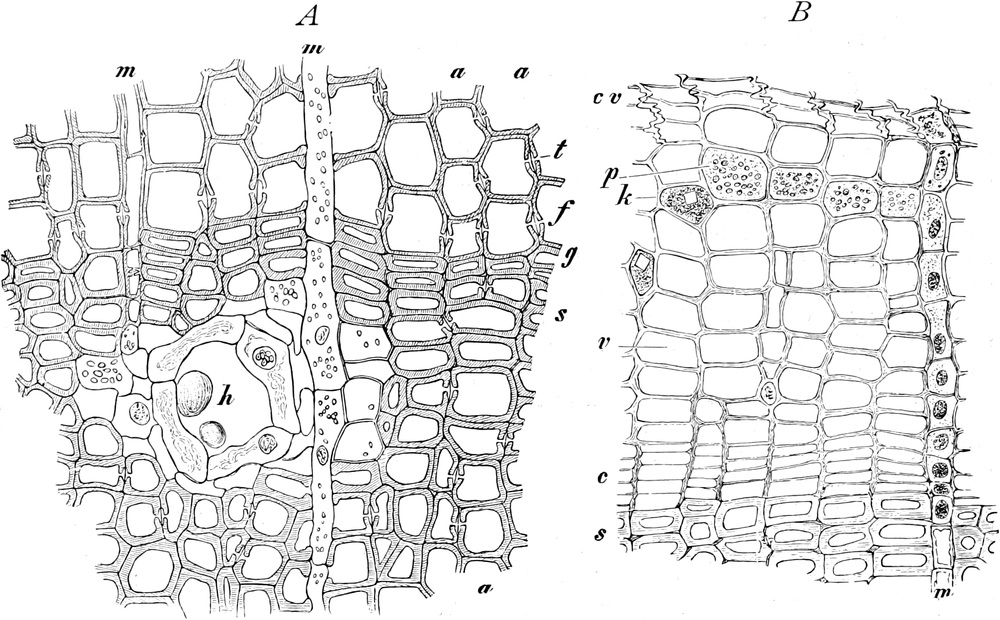
Fig. 173. A Partie eines Querschnittes durch das Kiefernholz an einer Jahresgrenze. f Frühholz, s Spätholz, t Hoftüpfel, a eine sich nach außen verdoppelnde Tracheïdenreihe, h Harzgang, m Markstrahlen. Vergr. 240. B Querschnitt aus dem Stamme der Kiefer, den äußeren Hand des Holzkörpers, das Kambium und den angrenzenden Bast in sich fassend. s Spätholz, c Kambium, v Siebröhren, p Bastparenchym, k Kristallzellen, cv außer Funktion gesetzte Siebröhren, m Markstrahlen. Vergr. 240. Nach SCHENCK.
Bei bestimmten Gymnospermen, vor allem den Abietineen (etwa der Kiefer), sind einzelne Zellreihen der Markstrahlen des Holzkörpers, gewöhnlich die oben und unten randständigen, ohne lebenden Inhalt, tracheïdal ausgebildet, durch Hoftüpfel untereinander und mit den Tracheïden verbunden (Fig. 174 tm). Vor der Zerdrückung durch die turgeszenten lebenden Markstrahlzellen werden sie durch besondere Verdickungsleisten der Wand geschützt. Sie erleichtern den Wasseraustausch in radialer Richtung unter den Tracheïden, die nur in den radialen Wänden getüpfelt sind. Bei den meisten anderen Nadelhölzern dagegen, denen solche tracheïdalen Elemente in den Markstrahlen fehlen, sind auch tangentiale Hoftüpfel in den Tracheïden des Holzes vorhanden, wodurch eine radiale Bewegung des Wassers gefördert wird. Auch die parenchymatischen Markstrahlzellen des Holzes sind mit den Tracheïden, und zwar durch große einseitig behöfte Tüpfel verbunden (Fig. 175 et).
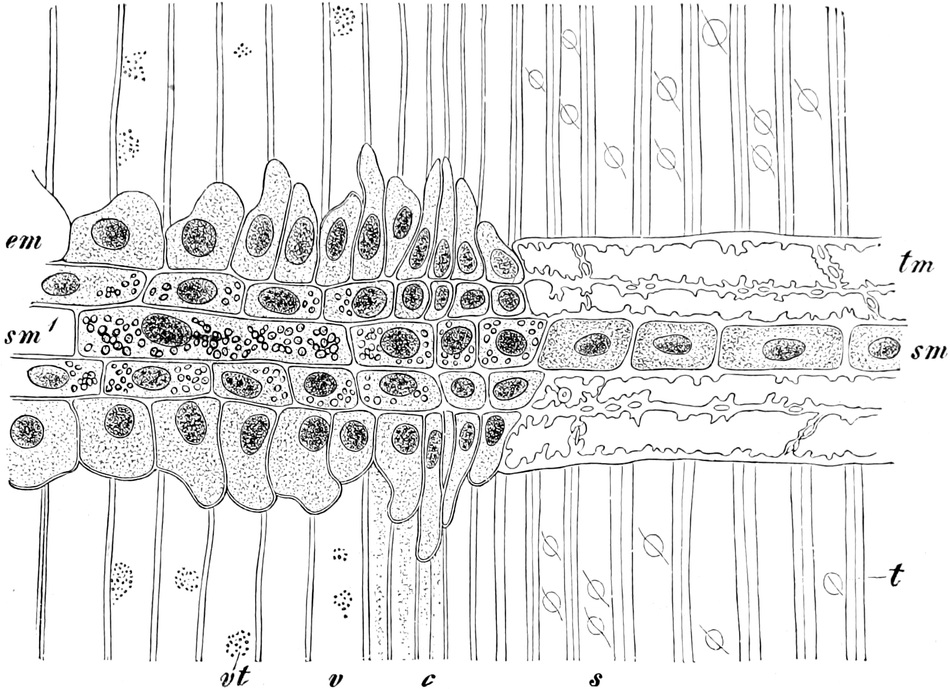
Fig. 174. Radialer Längsschnitt durch den Kiefernstamm, den Außenrand des Holzkörpers, das Kambium und den anschließenden Bast sowie einen Markstrahl in sich fassend. s Spättracheïden, t Hoftüpfel, c Kambium, v Siebröhren, vt Siebtüpfel, tm tracheïdale Markstrahlzellen, sm stärkeführende Markstrahlzellen im Holzkörper, sm′ im Bastkörper, em eiweißführende Markstrahlzellen. Vergr. 240. Nach SCHENCK.
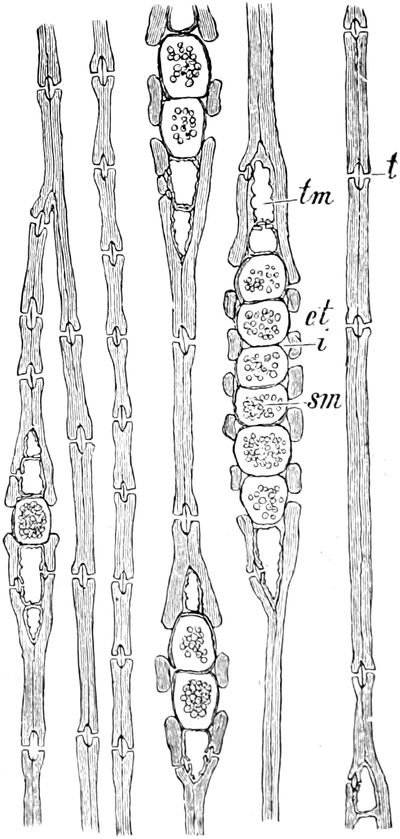
Fig. 175. Tangentialer Längsschnitt durch das Spätholz der Kiefer. t Hoftüpfel, tm tracheïdale, sm stärkeführende Markstrahlzellen, et einseitig behöfte Tüpfel, i Interzellularen am Markstrahl. Vergr. 240. Nach SCHENCK.
Schon mit dem bloßen Auge nimmt man auf Stammholzquerschnitten, ebenso wie bei den meisten Dikotylenhölzern, Jahresringe wahr (Fig. 176, 177). Betrachtung dünner Querschnitte durch Gymnospermenholz bei stärkerer Vergrößerung (Fig. 173 A) belehrt darüber, daß in jedem dieser Ringe die inneren Elemente (f) jeder radialen Tracheïdenreihe weitlumig und dünnwandig, die äußeren aber (s) englumig und dickwandig sind. Der Übergang der weiten zu den engen ist im Jahresring ganz allmählich, der Übergang der englumigen zu den weitlumigen des nächst äußeren Jahresringes aber unvermittelt. Die Jahresringe[95] im Holze kommen durch die Periodizität der Kambiumtätigkeit zustande, die mit dem Wechsel der Jahreszeiten in Beziehung steht. Im Frühjahr, zur Zeit, wo die neuen Triebe sich entwickeln, werden Tracheïden mit größerem Hohlraum ausgebildet als in der Folgezeit. So entsteht ein weitlumigeres Frühholz (Frühlings- oder Weitholz, Fig. 173 Af, 177 f), das vor allem der Wasserzufuhr nach den Verbrauchsorten dient, und späterhin ein englumiges Spätholz (Sommer- oder Engholz, Fig. 173 As, 177 s), das vor allem die Festigkeit des Stammes erhöht. In der zweiten Augusthälfte hört die Holzbildung in unseren Breiten bei den Stämmen meist auf. Sie beginnt von neuem im nächsten Frühjahr mit weitlumigen Elementen. Demgemäß zeichnet sich zwischen dem letztjährigen Spätholze und dem nächstjährigen Frühholze eine scharfe Grenze (Fig. 173 g, 177 i), die eben dem bloßen Auge schon kenntlich ist und die zur Feststellung des Alters des betreffenden Pflanzenteils dienen kann. In dem Holzkörper der Wurzeln ist die Grenze der Jahresringe meist undeutlicher.
Je weiter spitzenwärts eine sekundär verdickte Sproßachse oder Wurzel quer durchschnitten wird, um so weniger Jahresringe findet man. Das folgt naturgemäß aus dem Scheitelwachstum dieser Organe. Je älter die Jahresringe, um so früher müssen sie sich ja scheitelwärts auskeilen. In ähnlicher Weise hören auch ältere Bastschichten nach dem Scheitel zu auf.
Unter Umständen vermag die Zahl der Ringe im Holz die Zahl der Altersjahre zu überschreiten, nämlich wenn Blattverlust durch Frost, Raupenfraß oder andere schädliche Einflüsse das Austreiben der für die nächstjährige Vegetationsperiode bestimmten Knospen veranlaßt und Neubelaubung eine Wiederholung der Frühholzbildung bedingt. Andererseits kann bei Holzgewächsen, die sonst die Jahresringbildung streng einhalten, ausnahmsweise die Zahl der nachweisbaren Jahresringe kleiner ausfallen, als das Alter des betreffenden Individuums verlangt, weil sich die Jahresgrenzen gelegentlich nicht deutlich markiert haben. So kann es auch kommen, daß eine Zählung in einem Stammradius etwas weniger Jahresringe als in einem anderen ergibt.
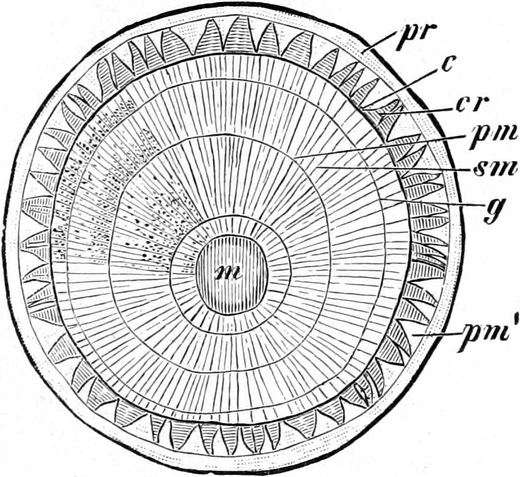
Fig. 176. Querschnitt durch einen im 4. Jahre stehenden Zweig der Linde (Tilia ulmifolia). pr Rinde, c Kambiumring, cr Bast, pm primäre Markstrahlen, pm′ äußeres, durch Dilatation erweitertes Ende eines primären Markstrahls, sm sekundärer Markstrahl, g Jahresgrenze, m Mark. Vergr. 6. Nach SCHENCK.
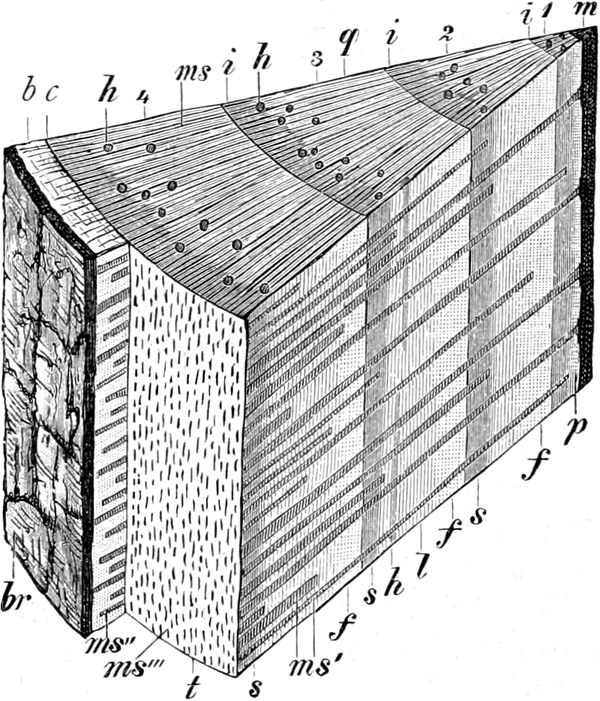
Fig. 177. Stück eines 4jährigen Stammteils der Kiefer (Pinus silvestris) im Winter geschnitten. q Querschnitt-, l radiale Längsschnitt-, t tangentiale Längsschnittansicht, f Frühholz, s Spätholz, m Mark, p primäre Gefäßteile, 1, 2, 3 und 4 die vier aufeinanderfolgenden Jahresringe des Holzkörpers, i Jahresgrenze, ms Markstrahlen in der Querschnittansicht des Holzkörpers, ms′ in der radialen Längsschnittansicht des Holzkörpers, ms″ innerhalb der Bastzone, ms‴ in der tangentialen Längsschnittansicht, c Kambiumring, b Bastzone, h Harzgänge, br die außerhalb der ersten Peridermlage befindliche, der Rinde entsprechende Borke. Vergr. 6. Nach SCHENCK.
Das Holz der Stämme und Wurzeln von Dikotylen läßt sich schon bei schwacher Vergrößerung leicht von einem Koniferenholze unterscheiden (Fig. 178–180). Abgesehen davon, daß in den Dikotylenhölzern außer Tracheïden und Parenchym stets noch Holzfasern und fast immer auch sehr weite Tracheen vorhanden sind, wachsen die verschiedenen Elemente, die Tracheen, Tracheïden, Holzfasern und Holzparenchymzellen, nicht übereinstimmend; infolgedessen können sie nicht ihre ursprüngliche radiale Anordnung und ihre ursprüngliche Form beibehalten. Außerdem werden im Frühholze der Jahresringe hauptsächlich sehr weite Wasserbahnen, besonders Tracheen ausgebildet (Fig. 178, 179 m), während im Spätholze vor allem die englumigen Holzfasern (l) und die faserförmigen Tracheïden (t) vorherrschen.
Wir besitzen unter unseren dikotylen Holzgewächsen auch solche, bei denen die Jahresringe sich deshalb nicht sehr deutlich abheben, weil die verschiedenen Formelemente des Holzes annähernd gleichförmig über den Jahreszuwachs verteilt sind, so bei der Weide. Ja, es kann in diesem Falle die Abzählung der Jahresringe ganz unmöglich werden, wie beim wilden Wein. Bei den Holzgewächsen der feuchtwarmen Tropengebiete mit ununterbrochener Vegetationszeit können die Jahresringe ebenfalls fehlen. Bei vielen sind aber auch hier jahresringähnliche Zonen ausgebildet.
Nur die wasserleitenden Elemente des jüngsten Jahresringes stehen in direkter Verbindung mit den Blättern der betreffenden Vegetationsperiode. Da die Pflanze mit der Entfaltung der Blätter im Frühjahr plötzlich viel Wasser durch Transpiration verbraucht, so versteht man, daß im Frühholz eben zunächst für die nötigen Wasserbahnen gesorgt wird. Bei vielen Holzgewächsen wird die Laubmenge während des Sommers nicht weiter vermehrt, infolgedessen kann das Kambium im Spätholze vorwiegend Festigungsgewebe bilden.
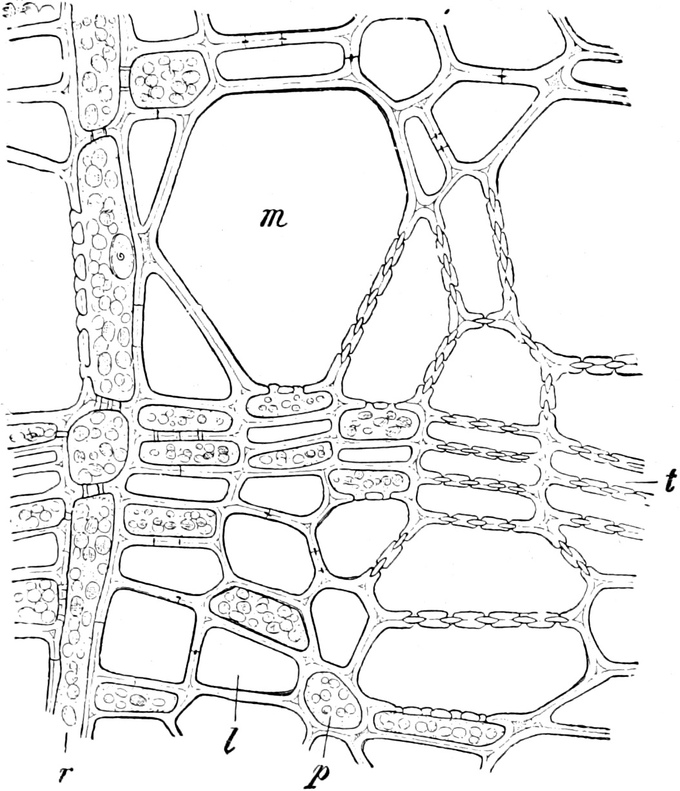
Fig. 178. Teil eines Querschnittes durch das Holz von Tilia ulmifolia an einer Jahresgrenze. Vergr. 540. Nach STRASBURGER.
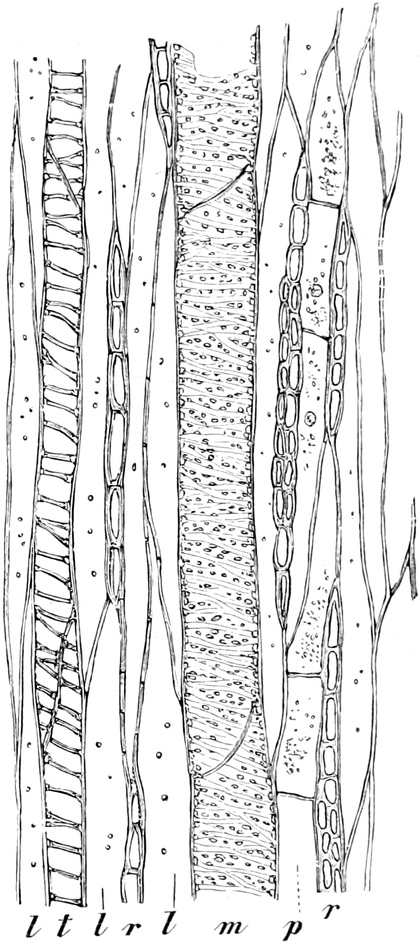
Fig. 179. Tangentialer Längsschnitt aus dem Holz von Tilia ulmifolia. Vergr. 160. Nach SCHENCK.
m Weites Tüpfelgefäß, t Tracheïden, l Holzfaser, p Holzparenchym, r Markstrahl.
Trotz allen Verschiedenheiten, die in der Struktur dikotyler Hölzer vorkommen, lassen sich für die Anordnung der verschiedenen Gewebearten doch bestimmte Regeln angeben, die stets befolgt werden. Die aus Tracheen oder Tracheïden bestehenden Gefäßstränge, reich verzweigt in radialer und tangentialer Richtung, bilden in der Längsrichtung des Holzes zusammenhängende Bahnen, die von den Wurzeln ohne Unterbrechung bis zu den dünnsten Zweigenden verlaufen. Nur so wird die ausreichende Wasserversorgung des Sproßsystems gewährleistet.
Holzparenchym (Fig. 178, 179 p) ist bei den meisten Dikotylenhölzern reichlich vorhanden, und zwar ebenfalls in Form längs verlaufender Stränge oder Schichten, die aber oben und unten im Holze früher oder später blind endigen. Das Holzparenchym bildet mit den Markstrahlen stets ein zusammenhängendes System lebender Zellen. Die Gefäße stehen immer mit diesen lebenden Holzparenchymzellen in Verbindung; bald werden sie rings von ihnen umhüllt, bald einseitig von ihnen begleitet (Fig. 178 p).
Das Holzparenchym umscheidet die Gefäße z. B. bei den Akazien u. a.; es bildet tangentiale Binden im Holze, an die die Gefäße sich einseitig anlehnen oder worin sie eingebettet sind, z. B. bei der Walnuß, der Edelkastanie und bei Eichen; manchmal ist es auf die Außenseiten der Jahresringe beschränkt.
Die Markstrahlen (Fig. 176 pm, sm: 178, 179 r) sind wie bei den Gymnospermen radial verlaufende niedere oder hohe, eine oder mehrere Zellschichten breite, unverzweigte oder meist verzweigte Bänder (Fig. 180 tm, sm), die durch das Kambium hindurch in den Bast eindringen (Fig. 176). Auch daran lehnen sich die Gefäßstränge hier und da an. Das Markstrahlparenchym verbindet, wie schon hervorgehoben, die Parenchymzellen des Bastes mit denen des Holzes, also alle lebenden Gewebe des Stammes und der Wurzel zu einer Einheit. In den Markstrahlen können auf diese Weise Assimilate, die im Baste abwärts strömen, radial in den Holzkörper und dort im Holzparenchym eine Strecke weit aufwärts oder abwärts geleitet werden. Diese Assimilate werden in den Markstrahlen und im Holzparenchym meist als Stärke oder auch als Fett aufgespeichert. Interzellularen, die den Markstrahl- und Holzparenchymsträngen folgen, dienen dem Gaswechsel der lebenden Elemente des Holzes.
Die Räume zwischen den Gefäß-, Holzparenchym-Strängen und Markstrahlen werden von Holzfasersträngen (Sklerenchym) ausgefüllt.
Die Höhe und Breite der Markstrahlen läßt sich leichter an tangentialen als an radialen Längsschnitten feststellen, weil man alsdann ihre Querschnitte vor sich hat. An solchen tangentialen Schnitten erscheinen die Markstrahlen spindelförmig (Fig. 179 r). Ihre Größe schwankt bei den meisten Hölzern nur innerhalb relativ enger Grenzen, doch bei gewissen anderen, so der Eiche und Rotbuche, sehr bedeutend. Die Eiche hat bis zu 1 mm breite und fast 1 dcm hohe große Markstrahlen, dazwischen zahlreiche sehr schmale niedrige. Bei der Pappel, der Weide, dem Buchsbaum sind alle Markstrahlen so klein, daß man sie auch mit der Lupe kaum unterscheiden kann. Besonders hoch und breit sind die primären, sich über die Länge eines ganzen Internodiums erstreckenden Markstrahlen bei vielen Lianen, so z. B. auch bei Aristolochia.
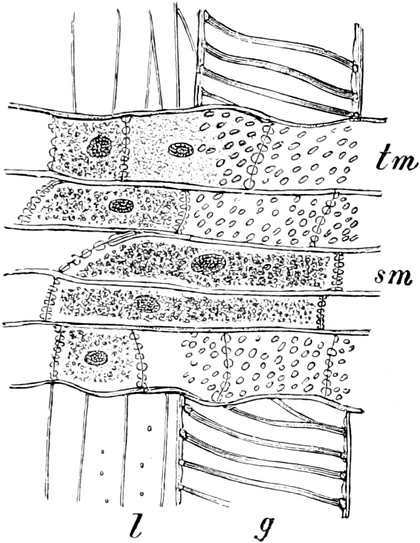
Fig. 180. Radialer Längsschnitt aus dem Holz von Tilia ulmifolia mit einem kleinen Markstrahl. g Gefäß, l Holzfasern, tm mit den Wasserbahnen durch Tüpfel verbundene, sm der Leitung der Assimilate vornehmlich dienende Markstrahlzellen. Vergr. 240. Nach SCHENCK.
Auch bei den Dikotylen, sehr ausgesprochen z. B. bei den Weiden, sind im Holzkörper meist Zellreihen des oberen und unteren Markstrahlrandes mit den Wasserbahnen durch einseitig behöfte Tüpfel verbunden. Ihre lebenden Zellen sind höher als die der mittleren Zellreihen; man hat sie daher auch als stehende Markstrahlzellen bezeichnet (Fig. 180 tm). Die mittleren Zellreihen sind in radialer Richtung stärker gestreckt, ohne besondere Verbindung mit den Wasserbahnen und vornehmlich auf Leitung und Speicherung der Assimilate eingerichtet: liegende Markstrahlzellen (Fig. 180 sm).
Die Markstrahl- und Holzparenchymzellen, die an die Gefäße angrenzen, nehmen Wasser aus den Wasserbahnen auf und geben es nach Bedarf an andere lebende Zellen ab; andererseits pressen sie im Frühjahr, zur Zeit der Knospenentfaltung, einen großen Teil der in ihnen gespeicherten Assimilate, vor allem Glykose und geringe Mengen von Eiweißstoffen, in die Gefäße ein, so daß diese Stoffe rasch nach den Verbrauchsorten gelangen. Demgemäß kann man während des Winters und zu Beginn des Frühjahrs Zucker und Eiweiß in den Gefäßen nachweisen. Diese Stoffe sind auch in dem Blutungssaft enthalten, den man im Frühjahr durch Bohrlöcher aus Birken, Ahornarten, Hainbuchen und anderen Bäumen gewinnen kann.
Maserbildung. Bei vielen technisch verwendeten Hölzern schätzt man vor allem außer der Farbe die Maserung. Sie beruht zunächst auf der Ausbildung der Jahresringe und der Markstrahlen, außerdem aber sehr oft, z. B. beim Nußbaumholz, auf einem welligen Verlauf der Formelemente des Holzes, der durch gedrängte Bildung von Seitenästen, Adventivknospen, Seitenwurzeln oder auch durch Wundreize u. dgl. veranlaßt worden ist.
C. Nachträgliche Veränderungen des Holzes. Bei den meisten Bäumen sterben die lebenden Elemente in den zentralen älteren Teilen des Holzkörpers ab, und die Wasserbahnen werden verstopft (Kernbildung), so daß nur die äußeren Holzschichten, die aus wenigen, und zwar den zuletzt entstandenen Jahresringen bestehen, noch lebende Zellen enthalten (Splint). Sie allein speichern noch Reservestoffe. Auch die Wasserleitung ist auf den Splint, ja vielfach sogar nur auf seine äußersten Schichten beschränkt; die peripheren Gefäße sind es ja, wie wir sahen, allein, die direkt mit den Blättern und mit den jüngsten Seitenwurzeln in Verbindung stehen. Der Kern dient nur noch der Festigung. Viel seltener als solche Kernhölzer sind Splinthölzer, deren gesamtes Holz Splint bleibt (Ahornarten, Birke, Linde). Kernhölzer fallen meist unmittelbar durch die hellere Farbe des Splintes auf; das dunklere Kernholz ist dichter, härter und fester als das Splintholz und durch Einlagerung verschiedener Stoffe gegen Zersetzung geschützt. Es gibt aber auch Kernhölzer, bei denen sich der Kern vom Splint durch die Farbe nicht unterscheidet und leicht zersetzt wird. Solche Stämme, wie die der Weiden, werden im Alter leicht hohl.
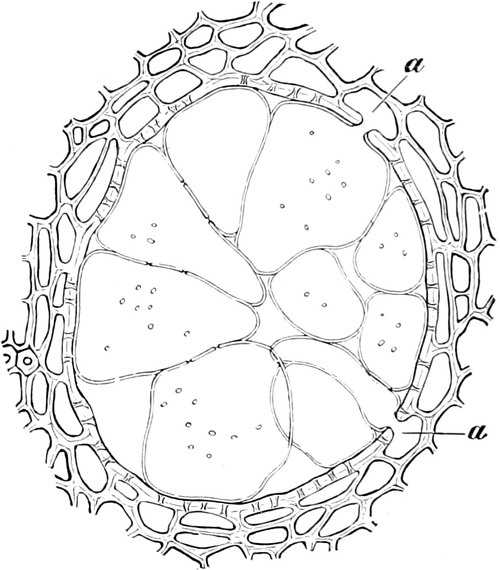
Fig. 181. Ein mit Thyllen erfülltes Gefäß, nebst den angrenzenden Elementen aus dem Kernholz der Robinie (Robinia Pseudacacia) im Querschnitt. Bei a und a ist der Zusammenhang der Thyllen mit ihren Ursprungszellen zu sehen. Vergr. 300. Nach SCHENCK.
Am schärfsten setzt sich der weißlichgelbe Splint vom Kernholz dort ab, wo letzteres eine dunklere Färbung zeigt, so bei unserer Eiche mit braunem Kern oder noch ausgesprochener beim Ebenholz (Diospyros), dessen Kern schwarz ist. Je dunkler das Kernholz, um so dauerhafter pflegt es zu sein. Vor dem Absterben bilden die lebenden Zellen des Holzes, die ihre Reservestoffe auflösen, meist verschiedene organische Stoffe, darunter besonders Gerbstoffe, die in die Membranen der umgebenden Elemente eindringen, ferner harz- und gummiartige Körper, die als Schutz- und Kerngummi ihre Hohlräume zum Teil verstopfen. Meist verleihen die Oxydationsprodukte der Gerbstoffe den toten Holzteilen die dunkle Färbung, und die Gerbstoffe schützen den toten Holzkörper vor Zersetzung. Die Gefäße in dem toten Holze werden teils durch Ansammlungen von Kerngummi, teils durch „Zellen“ verstopft, die die Gefäßlumina mehr oder weniger ausfüllen und als Thyllen[96] bezeichnet werden (Fig. 181); sie entstehen dadurch, daß lebende Holzparenchymzellen in die angrenzenden Gefäße durch die Tüpfel unter Dehnung der Schließhäute hineinwachsen. Thyllen können ferner in verwundeten Gefäßen entstehen; sie verschließen auch hier den Gefäßhohlraum. Auch anorganische Stoffe sind nicht selten in den Kernhölzern abgelagert, so bei Ulmus campestris und Fagus silvatica kohlensaurer Kalk, und zwar hauptsächlich in den Gefäßen; in den Gefäßen des Teakholzes (Tectona grandis) amorphe Kieselsäure. Die Kerne mancher Hölzer dienen Färbezwecken, z. B. liefert das Blau- oder Campecheholz (Haematoxylon campechianum L.) mit rotem Kern das Hämatoxylin.
4. Der Bast. A. Gewebearten und deren Funktionen. Auch den Bast (Fig. 173 B, 182) setzen meist drei Gewebearten zusammen: 1. längs verlaufende Stränge von Siebröhren (v), bei den Dikotylen mit Geleitzellen (Fig. 182 c), 2. bei vielen Gewächsen längs verlaufende Stränge meist toter Sklerenchymfasern, Bastfasern (Fig. 182 l) und 3. längs (p) und in den Markstrahlen (Fig. 173 Bm, 182 r) radial verlaufende Stränge von Parenchym mit Interzellularen: Bast- und Markstrahlparenchym. Dazu kommen oft noch Sekretzellen verschiedener Art (Kristallschläuche k, Milchröhren). Der Bast dient wie das Phloëm der Leitbündel vor allem dazu, die Assimilate zu leiten und vorübergehend zu speichern. Daneben trägt er zur Speicherung organischer Substanzen und oft zur Festigung bei. Die Siebröhren des Bastes haben bei vielen Pflanzen schräge Endwände (Fig. 182 v*); sie sind eiweißreich, dünnwandig, unverholzt und meist nur kurze Zeit tätig. Die Bastfasern sind sehr lang und englumig, stark verdickt, verholzt oder unverholzt; die Parenchymzellen sind in der Strangrichtung gestreckt, lebend, reich an Reservestoffen, dünnwandig und meist nicht verholzt.
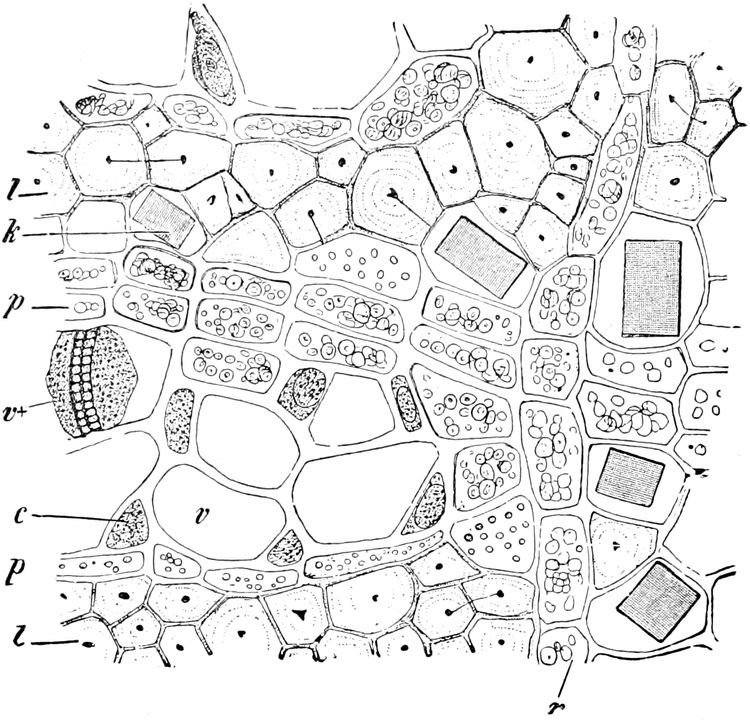
Fig. 182. Durchschnitt durch den Bast der Linde (Tilia ulmifolia). v Siebröhren, bei v* eine Siebplatte getroffen, c Geleitzelle, p Bastparenchym, k Kristallzellen des Bastparenchyms, l Bastfasern, r Markstrahl. Vergr. 540. Nach STRASBURGER.
In einiger Entfernung vom Kambium erhalten die Siebplatten der Siebröhren Kallusbeläge. Noch weiter außen werden die Siebröhren und ihre Geleitzellen zerdrückt (Fig. 173 B cv). In seltenen Fällen, so beim Weinstock, sind sie mehr als 1 Jahr tätig; in diesem Falle wird ihr Kallusbelag für die Zeit ihrer Tätigkeit wieder entfernt. Bei solchen Koniferen, die eiweißhaltige Bastparenchymzellen im sekundären Baste besitzen, werden diese wie die angrenzenden Siebröhren zerdrückt. Die stärkehaltigen Bastparenchymzellen hingegen bleiben jahrelang am Leben; sie werden sogar zwischen den zerdrückten Siebröhren vergrößert.
B. Anordnung der Gewebearten im Baste. Die einzelnen Gewebearten des Bastes verlaufen ähnlich wie im Holze. Die Siebstränge bilden verzweigte Bahnen, in denen die Siebröhren ohne Unterbrechung von der Wurzel bis in die Laubblattkrone ausgebildet sind. Außerdem grenzen die Siebstränge hier und da ebenso wie die längs verlaufenden Bastparenchymstränge an die auch im Baste bandförmigen (Fig. 177 ms″) Markstrahlen an, die, wie wir schon sahen, die radialen Fortsetzungen der Holzmarkstrahlen sind. So können die Assimilate aus der Laubblattkrone einesteils innerhalb des Bastes nach den Wurzeln abströmen, andernteils in der schon geschilderten Weise aus dem Baste durch die Markstrahlen in die lebenden Zellen des Holzes gelangen, wo sie gespeichert werden.
Die Gewebearten des Bastes sind oft sehr regelmäßig zu tangentialen, nur von den Bastmarkstrahlen unterbrochenen Binden angeordnet (Fig. 182). Die Kambiumperiodizität spricht sich im Baste aber nicht aus; Jahresringe kommen also nicht vor. Das Kambium fährt auch nach Abschluß der Spätholzbildung im Sommer und Herbst, solange es die Witterungsverhältnisse gestatten, noch fort, nach außen Bast zu erzeugen.
So wechseln bei der Linde Bänder von (Fig. 182) Siebröhren (v) nebst Geleitzellen (c), stärkeführendem Bastparenchym (p), Kristallzellen (k), Bastfasern (l), flachen Bastparenchymzellen (p) und endlich wiederum Siebröhren miteinander ab. Der Unterschied im Aussehen der Baststränge bei verschiedenen Holzgewächsen wird vornehmlich durch die größere oder geringere Weite der Siebröhren, das Vorhandensein oder das Fehlen von Bastfasern, endlich durch die Art der Verteilung aller dieser Elemente bedingt.
Bei den Kiefern und verschiedenen anderen Abietineen unter den Gymnospermen sind eiweißreiche Zellreihen an den oberen und unteren Markstrahlrändern ausgebildet (em Fig. 174). Sie sind den Siebröhren dicht angeschmiegt, mit ihnen durch Siebtüpfel verbunden, werden zugleich mit den Siebröhren entleert und hierauf zusammengedrückt. Bei den Dikotylen sind die Markstrahlen im Baste einfacher gebaut als im Holzkörper. Die Aufgabe der Markstrahlzellen, die innerhalb des Bastes abwärts geleiteten Stoffe aufzunehmen, zeigt sich durch ihre Tüpfel an, die bei den Dikotylen nicht nur die Zellreihen des Markstrahls mit dem Bastparenchym, sondern auch mit den Geleitzellen der Siebröhren verbinden.
Folgen des sekundären Dickenwachstums für die Gewebe außerhalb des Kambiummantels. 1. Dilatation. Indem das Kambium nach innen immer mehr Holz, nach außen immer neuen Bast bildet, wächst der Stengel oder die Wurzel sekundär in die Dicke. Die Dauergewebe, die außerhalb des Kambiummantels gelegen sind: die Epidermis, die Rinde, die primären Phloëmstränge und der Bast, bleiben von diesem Dickenwachstum natürlich nicht unbeeinflußt; sie werden tangential gedehnt, zerrissen, zerdrückt, verschoben oder auch durch tangentiales Wachstum verbreitert (Dilatation). Zu solchem Dilatationswachstum sind natürlich vor allem die lebenden Parenchymzellen der Rinde, des Phloëms, des Bastes (namentlich des Markstrahlparenchyms), bei einigen Holzgewächsen sogar die Epidermiszellen befähigt[97]. Alle diese Zellen wachsen dabei sehr stark in tangentialer Richtung und werden meist durch radiale Wände geteilt. Im Baste ist dieses Wachstum häufig bei den Markstrahlen sehr auffällig: es kann in ihnen, z. B, bei der Linde, geradezu zur Ausbildung sekundärer Meristeme kommen, die durch Teilungen Parenchymzellreihen in tangentialer Richtung nach beiden Seiten abgeben, wodurch die Bastmarkstrahlen von Jahr zu Jahr nach außen mehr erweitert werden (Fig. 176 pm′). Die Siebröhren und ihre Geleitzellen aber, die nur kurze Zeit tätig sind und dann absterben, werden samt den Sekretzellen zerdrückt; auch die Sklerenchymfasern der Rinde und des Bastes beteiligen sich an der Dilatation meist nicht. War in der Rinde ein Hohlzylinder von Sklerenchymfasern vorhanden (Fig. 184 sc), so wird er in tangentialer Richtung zerrissen; in die Risse wachsen die in Dilatation begriffenen Parenchymzellen ein, füllen die Lücken aus und werden darin bei vielen Gewächsen zu dickwandigen Steinzellen (Fig. 184 s). Auch sonst wandeln sich während der Dilatation Parenchymzellen der Rinde und des Bastes einzeln, gruppen- oder schichtenweise nachträglich in Sklerenchymzellen um.
Ein jahrelanges Dilatationswachstum der Epidermis findet sich bei verschiedenen Rosen, Akazien, Ilex-, Ahornarten, den Misteln u. a. m. Solche Epidermen haben meist mächtig verdickte Außenwände. Sie vermögen diese Wände in dem Maße, wie sie an der Oberfläche Risse bekommen und zerstört werden, von innen durch neue Verdickungsschichten zu verstärken.
2. Periderm. Gewöhnlich nimmt aber die Epidermis an der Dilatation nicht teil; sie wird passiv gedehnt und schließlich zersprengt. Schon lange vor dieser Zersprengung bildet sich ein neues Abschlußgewebe, der Kork aus, der die Epidermis später ersetzt und die Teile, die im Dickenwachstum begriffen sind, gegen Austrocknung schützt. Der Kork entsteht durch die Tätigkeit eines besonderen sekundären Meristems, das sich an der Peripherie der Organe bildet (Fig. 183).
Meist beginnt die Bildung dieses Korkkambiums (Phellogens) schon in der ersten Vegetationsperiode, bald nach oder gar schon vor Beginn des sekundären Zuwachses. Es kann aus der Epidermis selbst, und zwar durch tangentiale Teilungen ihrer Zellen hervorgehen. Meist aber bildet es sich aus der Rindenschicht, die auf die Oberhaut folgt, seltener aus tieferen Rindenschichten oder aus dem Perizykel. Das letzte ist meist bei den Wurzeln der Fall (Fig. 169 B k). Das Korkkambium erzeugt hauptsächlich nach außen Zellen, und zwar in radialen Reihen. Dieses Meristem mit sämtlichen Produkten seiner Tätigkeit nennt man Periderm. Die nach außen abgegebenen Zellen werden zu Korkzellen, die nach innen gebildeten zu chlorophyllreichen, unverkorkten Rindenzellen, die sich abrunden und die Rinde ergänzen. Hat die Bildung des Periderms begonnen, so bräunt sich die Stengeloberfläche.
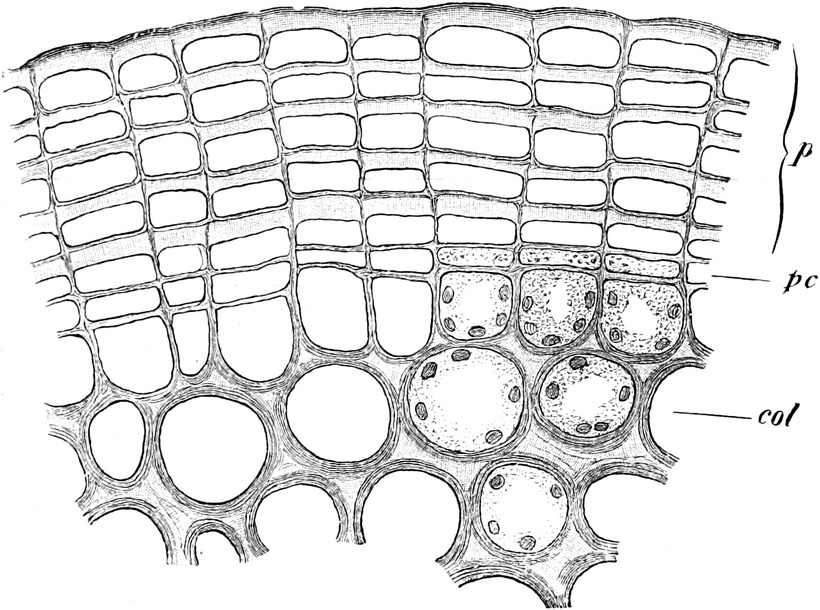
Fig. 183. Querschnitt durch die äußeren Teile eines einjährigen Zweiges von Pirus communis im Herbst. Beginn der Peridermbildung. p Kork, pc Korkkambium, col Kollenchym. Die Korkzellen haben verdickte Außenwände. Vergr. 500. Nach SCHENCK.
Die Gesamtheit der Zellen, die aus dem Phellogen nach innen entstehen, bezeichnet man als Phelloderm.
Das Korkkambium ist in der Regel ein typisches Initialenkambium (vgl. S. 39), zumal wenn es Kork und Phelloderm liefert. Eine Initialschicht kann aber auch, z. B. bei fast allen Monokotylen, fehlen; alsdann teilen sich die Dauerzellen, aus denen das Korkkambium hervorgeht, in eine Anzahl Tochterzellen, die zu Korkzellen werden, worauf der gleiche Vorgang auf angrenzende Dauerzellen übergreift (Etagenkork).
Peridermbildung pflegt auch in solchen Pflanzen späterhin einzutreten, deren Epidermen zunächst jahrelang dilatiert werden. Sie geht nur den Mistelarten ab.
Echter Kork fehlt aber noch den Kryptogamen, selbst den Pteridophyten. Einen Ersatz hierfür bietet, wo ein entsprechender Schutz nötig ist, die Imprägnierung der Zellwände mit einem sehr widerstandsfähigen braunen Stoff oder die Anlagerung von Suberinlamellen in unverkorkte Zellen, also die Umwandlung von Zellschichten in Kutisgewebe[98].
Durch die Tätigkeit des Korkkambiums können dicke, außen rissige Korkkrusten gebildet werden, wie z. B. bei der Korkeiche, aus deren Kork die Flaschenkorke geschnitten werden. Die Schichtung, die sie zeigen, entspricht Jahresproduktionen. In anderen Fällen werden Korkhäute mit glatter Oberfläche von nur ganz wenigen Zellagen Dicke gebildet (Fig. 59, 183), deren äußerste Schichten dem Dickenwachstum des Stengels durch passive Dehnung lange Zeit folgen, schließlich zerreißen und abschilfern.
Der Flaschenkork (Fig. 58) wird von breiten Lagen weicher, weiter Korkzellen gebildet, mit denen schmale Lagen, die Grenzen der Jahresproduktion bezeichnender, flacher Korkzellen abwechseln, wie man bei Korkstöpseln erkennen kann. Die mit lockerem Pulver angefüllten Poren, die den Flaschenkork in ganzer Dicke radial durchsetzen, sind seine Lentizellen (vgl. S. 50). Die erste Korkschicht der Korkeiche wird nach dem 15. Jahre bis auf das Korkkambium künstlich vom Stamm entfernt, worauf einige Zellagen tiefer sich ein neues Kambium bildet, das den technisch verwertbaren Flaschenkork liefert. Dieser wird alle 6–8 Jahre geschält. Da solche toten Korkkrusten der Dilatation nicht folgen können, so müssen sie außen allmählich rissig werden.
3. Borkebildung. Was vom Korkkambium nach außen zu liegen kommt, wird von weiterer Nahrungs- und Wasserzufuhr abgeschnitten und muß absterben. Alle auf solche Weise abgetrennten toten Gewebe werden mitsamt den Peridermschichten als Borke bezeichnet. So können je nach dem Entstehungsorte des Periderms die Epidermis oder kleinere oder größere Teile der Rinde zu Borke werden. Gewöhnlich stellt das erste Korkkambium in Stamm und Wurzel bald (aber z. B. nie bei der Buche) seine Tätigkeit ein. Es wird ein neues tiefer im Stamm angelegt, dessen Tätigkeit ebenfalls nach einiger Zeit erlischt. Hierauf entsteht weiter innen wieder ein neues, wie es Fig. 184 für die Steineiche zeigt. Schließlich sind es nicht mehr primäre, sondern sekundäre Gewebe, nämlich die lebenden Parenchyme der Bastzone, in denen das neue Korkkambium sich bildet, so daß an älteren Stämmen das lebende Gewebe außerhalb des Kambiummantels nur noch sekundären Ursprunges ist, und auch die Borke abgestorbene sekundäre Gewebe enthält. Die Gewebe, die durch die Korkschichten vom übrigen Gewebe des Körpers abgeschnitten worden sind, werden von Nährstoffen entleert und enthalten nur Nebenprodukte des Stoffwechsels. Die Borke vermag der weiteren Dickenzunahme des Stammes oder der Wurzel natürlich nicht mehr zu folgen, blättert mit der Zeit entweder außen ab oder zerreißt durch Längsrisse. Sie stellt einen noch viel vollkommeneren Schutzmantel als der Kork sowohl gegen Wasserverlust wie gegen Erwärmung dar.
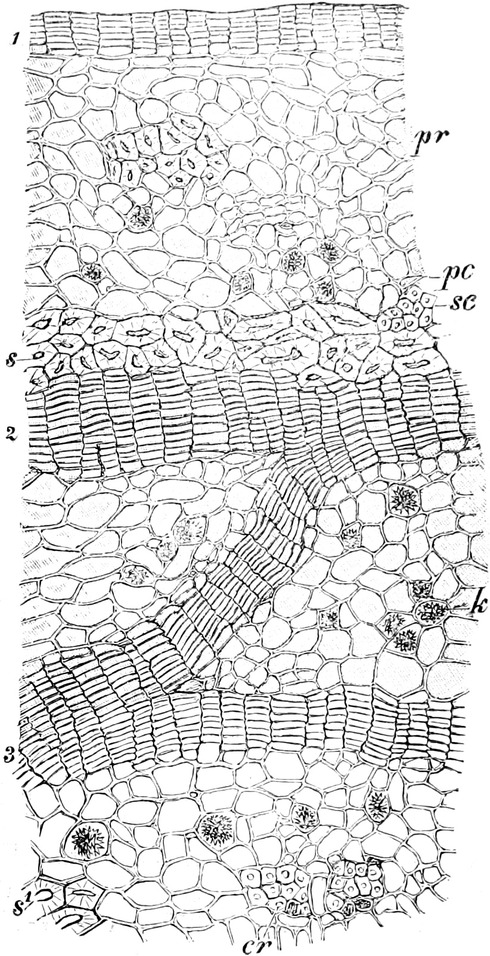
Fig. 184. Querschnitt aus der Stammoberfläche der Steineiche (Quercus sessiliflora). 1, 2 und 3 nacheinander erzeugte Korkschichten. pr Durch nachträgliche Dilatation veränderte Rinde, pc Grenze des Perizykels, sc Sklerenchymfasern aus einem zersprengten Sklerenchymfaserringe des Perizykels, s Steinzellen, nach der Zersprengung dieses Ringes aus Parenchym entstanden, s′ Steinzellen im sekundären Zuwachs, cr Bastfasern von Kristallzellen begleitet, k Zellen mit Kristalldrusen. Alles Gewebe außerhalb der innersten Korkschicht abgestorben und gebräunt, in Borke verwandelt. Vergr. 255. Nach SCHENCK.
Durch die Borkebildung werden an älteren sekundär verdickten Pflanzenteilen die äußeren, jeweils ältesten Teile des Bastes abgestoßen. Die Folge davon ist, daß der Bastmantel immer nur schmal bleibt. Festigungselemente können also nur dann zu dauernden Bestandteilen der Stämme werden, wenn sie innerhalb des Kambiums, d. h. im Holze entstehen.
Umfassen die Korkschichten und die Korkkambien, aus denen sie entstanden sind, nur begrenzte Teile der Stammoberfläche, so schneiden sie schuppenförmige Gewebestücke aus ihr heraus. Dabei setzen jüngere Korklagen mit ihren Rändern an ältere an. In solcher Weise erzeugte Borke heißt Schuppenborke, so bei der Platane, der Eiche (Fig. 184), unseren Nadelhölzern. Bilden die Korklagen dagegen geschlossene Mäntel, so werden stammumfassende Rindenmassen als Ringelborke entfernt, so beim Weinstock, Kirschbaum, Geißblatt und bei der Waldrebe.
Bei solchen Stämmen, bei denen die Borke abblättert, geschieht das nicht in rein mechanischer Weise, sondern durch Vermittlung von Trennungsschichten aus besonders dünnwandigen Kork- oder Phelloidzellen (vgl. S. 50), die zwischen die übrigen, oft stark verdickten Kork- oder Phelloidschichten des Periderms eingeschaltet sind. Diese Trennungsschichten werden durch hygroskopische Spannungen der Borke durchrissen. Schwer sich ablösende Borke wird während der Dickenzunahme des Stammes nur rissig (rissiges Aussehen der Rinde bei den meisten alten Bäumen).
Die braune oder rote Färbung, die die Borken meist zeigen, wird durch ähnliche Derivate von Gerbstoffen wie die Färbung vieler Kernhölzer veranlaßt. Diese antiseptisch wirksamen Stoffe bedingen die große Widerstandsfähigkeit der Borke. Die weiße Färbung der Birkenborke rührt von Betulin (Birkenharz) her, das als feinkörniger Inhalt die Korkzellen füllt.
Wundenheilung[99]. Im einfachsten Falle sterben die verletzten Zellen am Körper der Landpflanzen ab, bräunen sich und vertrocknen, während die Wände der darunter liegenden, unverletzt gebliebenen Zellen mit Schutzstoffen imprägniert, unter Umständen auch mit Suberinlamellen versehen, also zu Kutisgewebe werden. Bei größerer Ausdehnung der Wunde bilden aber die Phanerogamen unter diesen Zellschichten ein Korkkambium aus, das Wundkork erzeugt. So werden auch die Blattnarben, die beim Laubfall entstehen (S. 104), zunächst durch Verholzung und Verkorkung der freigelegten Zellen, hierauf meist noch durch Ausbildung einer Korkschicht abgeschlossen, die an die des Stammteils ansetzt. Die Enden der Gefäße an der Blattnarbe füllen sich entweder mit sog. Schutzgummi oder mit Thyllen oder mit beidem; die Enden der Siebröhren werden zerdrückt und verholzen.
Wenn eine Wunde ein noch junges Gewebe bloßlegt, kommt es gewöhnlich zur Bildung eines Kallus. D. h. alle an die Wunde grenzenden lebenden Zellen wuchern aus ihr hervor, teilen sich und schließen zusammen. Diese Kalluswucherung kann an ihrer Oberfläche unmittelbar verkorken und so den nötigen Schutz gewähren. In den meisten Fällen bildet sich aber in der Peripherie des Kallus ein Korkkambium aus, das Kork erzeugt. Ausgedehnte Wunden an älteren Stammteilen der Gymnospermen und Dikotylen, die bis in den Holzkörper reichen, werden überwallt: Das an die Wundränder grenzende Stammkambium wächst wulstartig zu einem Kallus hervor; der Wulst schließt sich durch den Kork nach außen ab, während in seinem Innern eine Kambiumschicht differenziert wird, die mit dem Stammkambium in Verbindung tritt. Dieses Kambium bildet, wie das angrenzende, nach innen Holz, nach außen Bast. So vergrößern sich die Überwallungswülste und decken allmählich die Wundfläche. An der bloßgelegten Holzfläche sind, falls sie noch aus Splint bestand, die toten Elemente durch Wundgummi verstopft, den die lebenden Zellen des Holzes erzeugen; die ganze Stelle ist gebräunt. Gelingt es den Überwallungswülsten, sich über der Wundfläche mit den Rändern zu erreichen, so verschmelzen schließlich ihre Kambien zu einer einheitlichen Meristemschicht, die weiter eine zusammenhängende Holzschicht nach innen und eine Bastschicht nach außen bildet. Das deckende Holz verwächst nicht mit dem bei der Verwundung bloßgelegten. Letzteres ist ja gebräunt und abgestorben. Daher lassen sich in Stämme eingeschnittene Zeichen, die bis auf den Holzkörper reichen, nach ihrer Überwallung wiederfinden. Durch Überwallung vom Kambiummantel aus werden auch Aststümpfe mehr oder weniger vollständig abgeschlossen. Das über den Wunden erzeugte Holz ist in seinem Bau von normalem Holz zunächst verschieden, wird daher als Wundholz bezeichnet. Es besteht aus fast isodiametrischen Zellen, auf die erst allmählich gestrecktere Formen folgen. Beim Kirschbaum erzeugt das Kambium infolge von Verwundungen statt normaler Holzelemente Nester dünnwandiger Parenchymzellen, die in Gummibildung eintreten (S. 33).
2. Anpassungen des Kormus an die Lebensweise und an die Umwelt[100].
Der äußere und innere Bau des Kormus steht in engen Beziehungen zu seiner Lebensweise und diese wieder zur Außenwelt. Wir finden, daß fast jede Pflanze durch ihren äußeren und inneren Bau an ihre Lebensweise und an ihre gewohnte Umwelt, an ihren Standort, angepaßt ist. Darauf vor allem beruhen die gemeinsamen Züge, die einheitliche Physiognomie, der Gewächse eines Standortes und darauf auch die Unterschiede in der Physiognomie der Vegetation zwischen solchen Pflanzenstandorten auf der Erde, wo die Außenfaktoren, z. B. das Klima, sehr verschieden sind. Infolgedessen sind die Vegetationsorgane nicht bei allen Kormophyten typisch ausgebildet. Oft sehen sie ganz anders aus, da die Grundformen in verschiedenster Weise abgeändert, metamorphosiert sein können. Erst eine sehr genaue entwicklungsgeschichtliche oder anatomische Untersuchung ermöglicht es, bei vielen Kormophyten nachzuweisen, daß auch ihre ganz abweichend gestalteten Organe immer wieder nur Metamorphosen der drei Grundorgane des Kormus: Wurzel, Stengel, Blatt sind, und festzustellen, welcher Grundform sie homolog sind. Der äußere Bau und die Funktionen der fertig ausgebildeten Organe können nämlich sehr leicht irreführen, weil nicht selten ein Grundorgan, z. B. eine Sproßachse, Bau und Funktionen eines anderen, z. B. eines Blattes, übernommen hat, oder weil verschiedene Grundorgane zu Werkzeugen von gleichem Bau und gleicher Funktion umgebildet worden sind, also bloß analog, aber nicht homolog sind. Bei Berücksichtigung aller morphologischen Eigenschaften eines abgeänderten Organes wird man aber in der Regel keinen Zweifel über seine Abkunft hegen.
Die Form einer Pflanze und die Ausbildung ihrer Teile ist in allererster Linie an die Ernährungsweise des Gewächses angepaßt. Infolgedessen sind wichtige und sehr auffällige morphologische Unterschiede zwischen solchen Kormophyten vorhanden, die mit anorganischen Nährstoffen auskommen (autotrophe K.) und solchen, die organische Nahrung nötig haben (heterotrophe K.).
A. Autotrophe Kormophyten.
An Autotrophie sind die grünen Pflanzen in ihrem Bau angepaßt. Soweit sie Kormophyten sind, wurden ihre typischen Baueigentümlichkeiten im letzten Abschnitte besprochen. Die grünen Kormophyten können aber untereinander wieder sehr verschieden gebaut sein; denn sie sind in ihrem Bau auch noch an ihre Umwelt angepaßt, in der sie leben, und diese Umwelt kann recht mannigfaltig sein.
Von allen den vielen Faktoren, die in der Umwelt wechseln können, hat den bei weitem größten Einfluß auf die Gestaltung der grünen Pflanzen das Wasser, nächstdem das Licht. Das ist leicht begreiflich. Nur wenn genügend Wasser verfügbar ist, vermag ja, wie jedermann weiß, die Pflanze ihr Leben zu fristen. Und nur wenn sie genügend Licht aufnehmen kann, kann sie autotroph sein, organische Substanz aus anorganischer aufbauen.
a) Anpassungen an den Feuchtigkeitsgehalt der Umwelt.
1. Wasserpflanzen, Hydrophyten[101]. Zu besonderen Baueigentümlichkeiten führte das Leben im Wasser, wo dauernd mit der ganzen Oberfläche der Pflanze, also auch mit Stamm und Blättern, Wasser und Nährsalze und nur aus dem Wasser die nötigen Gase (Kohlensäure und Sauerstoff) aufgenommen werden können. Zum Verständnis der Lebensbedingungen im Wasser ist es unerläßlich, den Gehalt des Wassers an diesen Gasen zu kennen und mit dem der Luft zu vergleichen. Das Liter Luft enthält etwa 210 ccm Sauerstoff und 0,3 ccm Kohlensäure. Im Liter Wasser sind dagegen z. B. bei 20° (im Falle der Sättigung) nur etwa 6 ccm Sauerstoff, dagegen wiederum etwa 0,3 ccm Kohlensäure vorhanden. Den Wasserorganismen steht also zwar ungefähr ebensoviel Kohlensäure (oder meist sogar noch etwas mehr) wie in der Luft, aber sehr viel weniger Sauerstoff zur Verfügung, wenigstens im unbewegten Wasser, da der Sauerstoff im Wasser sehr langsam diffundiert.
Nicht selten sind die Wurzeln überhaupt nicht mehr (Utricularia, Ceratophyllum, Wolffia) oder nur schwach ausgebildet. Der Sproß aber ist hier anatomisch insofern der Wurzel ähnlich geworden, als er auf seinen stets sehr dünnen Epidermisaußenwänden nur eine sehr zarte Kutikula ausbildet, die dem Wasser- und Salzeintritt, wenigstens an den Blättern[102], kaum Schwierigkeiten entgegenstellt. Zur Langsamkeit der Gasdiffusion im Wasser und zur Armut des Wassers an Salzen steht aber wohl in Beziehung eine Oberflächenvergrößerung der meist sehr dünnen, submersen Blätter, häufig durch feine Zerteilung der Blattflächen (Batrachium Fig. 139, Utricularia, Myriophyllum, Ceratophyllum), während die Schwimm- und Luftblätter meist typisch ausgebildet sind (Heterophyllie, vgl. S. 102). Anatomisch sind die submersen Blätter von diesen Blättern dadurch verschieden, daß ihrer chlorophyllhaltigen Epidermis meist die Spaltöffnungen und in der Regel auch die Haare fehlen, ferner dadurch, daß ihr an großen Interzellularen reiches Mesophyll aus gleichartigem Parenchym besteht, also nicht in Palisaden- und Schwammparenchym differenziert ist; infolgedessen zeigen die Blätter im inneren Bau bilaterale Symmetrie (Fig. 185). Mit dem Mangel der Transpiration und eines lebhaften Wassertransportes bei untergetauchten Wasserpflanzen geht Hand in Hand die schwache Ausbildung der wasserleitenden Elemente in den Stengeln und Blättern, ferner der Mangel eines sekundären Dickenwachstums. Der Auftrieb im Wasser macht auch das Festigungsgewebe unnötig; höchstens in rasch strömendem Wasser wird für die nötige Zugfestigkeit durch zentrale Lagerung der Leitbündel gesorgt.
Eine schwache Wasserdurchströmung der Pflanze, verbunden mit Wasserausscheidung durch die Apikalöffnungen der Blätter (vgl. S. 99), läßt sich aber selbst bei vielen submersen Wasserpflanzen nachweisen.
Auffallend bei fast allen Wasser- und auch Sumpfpflanzen ist die mächtige Entwicklung der Interzellularen. Sie sind ganz besonders weit, bilden ein System von oft sehr regelmäßig geformten Luftkammern und Luftkanälen und werden durch parenchymatische Zellschichten getrennt, die meist nur eine Zellage stark sind; so in den Stengeln von Papyrus, Potamogeton u. a., den Blattstielen der Nymphaeaceen, den Wurzeln der Onagracee Jussieua. Man hat solche Gewebe als Luftgewebe oder Aërenchym bezeichnet; denn solche weiten Luftkanäle sind Luftspeicher, zugleich ermöglichen sie eine sehr rege Gasdiffusion im Innern des Pflanzenkörpers: den schnellen Transport von Sauerstoff aus den assimilierenden grünen Teilen in die nicht grünen; sie begünstigen also die Atmung.
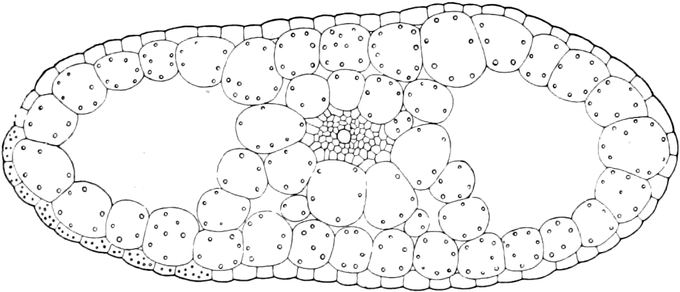
Fig. 185. Blattquerschnitt von Zanichellia palustris. Vergr. 146. Nach SCHENCK.
Bei manchen Sumpfpflanzen, die mit ihren unterirdischen Organen in sehr sauerstoffarmem Sumpfboden leben, so z. B. bei gewissen Palmen und bei Mangrovepflanzen der tropischen Küstensümpfe, von denen einige durch ein System sproßbürtiger, stelzenförmiger Luftwurzeln (Stelzwurzeln) sich im Schlamme verankern (Fig. 187)[100], werden besondere Organe zur Zuführung von Sauerstoff ausgebildet: aus dem Sumpfboden aufsteigende Atemwurzeln (Pneumatophoren Fig. 186), die aus der Luft durch Lentizellen-ähnliche Öffnungen (Pneumathoden) Sauerstoff aufnehmen und durch Luftgewebe zu den unterirdischen Teilen gelangen lassen.
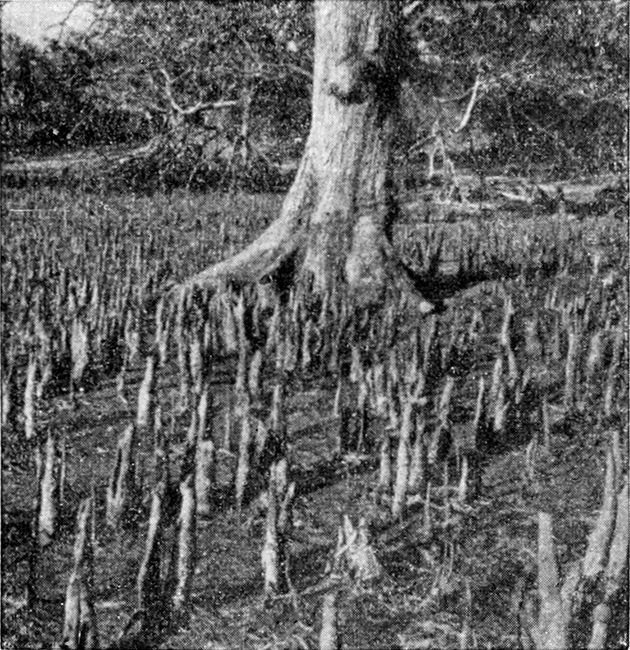
Fig. 186. Atemwurzel von Sonneratia alba. Verkleinerung einer Abbildung in den „Vegetationsbildern“; nach JOH. SCHMIDT.
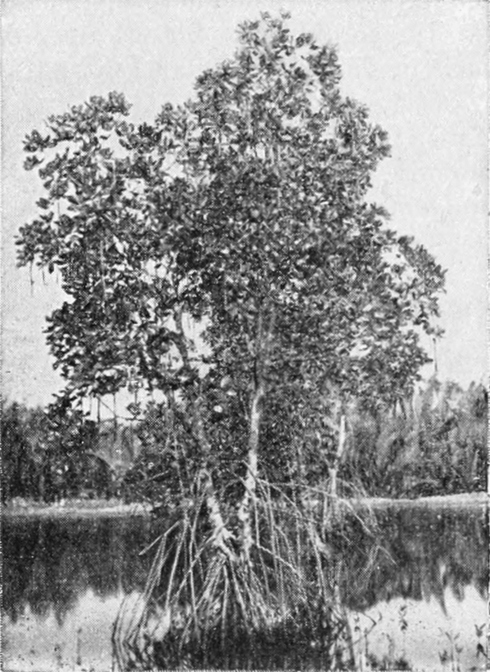
Fig. 187. Stelzwurzeln bei Rhizophora mucronata. Malayischer Archipel. Nach G. KARSTEN.
2. Die Landpflanzen. Sie nehmen meist nur aus dem Boden Wasser und Nährsalze, aus der Luft Kohlensäure, dagegen Sauerstoff sowohl aus dem Boden wie aus der Luft auf und geben mit ihren Luftsprossen Wasser in Dampfform (durch Transpiration) an den Luftraum ab.
Eine Ausnahme bilden nur einige Gewächse sehr feuchter Örtlichkeiten, die mit ihrer ganzen Oberfläche Wasser absorbieren; besonders die Hymenophyllaceen der tropischen Regenwälder. Manche von ihnen bilden keine Wurzeln aus, besitzen aber an den Wasser aufnehmenden Blättern oder Stengeln oder beiden ein System von verschieden gestalteten Haaren, das eine gewaltige Oberflächenvergrößerung bedingt.
Die Landpflanzen haben verschiedenen Bau, je nachdem es Pflanzen immerfeuchter Standorte, Pflanzen trockener Standorte und Klimate oder Pflanzen wechselfeuchter Klimate sind.
a) Anpassungen an immerfeuchte Standorte, Hygrophyten[103]. Landpflanzen, die dauernd in sehr feuchter Atmosphäre leben (Hygrophyten, Hygrophile), z. B. viele tropische Schattenpflanzen, bedürfen wie die Wasserpflanzen keine Einrichtungen, die die Transpiration herabsetzen, ja haben sogar, scheint es, solche, die die Wasserabgabe der Luftsprosse fördern (Hygromorphie). Nur durch solche Einrichtungen dürfte die genügend starke Wasserbewegung aus den Erdwurzeln in die oberirdischen Organe gesichert sein, die zur Beschaffung und zur Fortbewegung der nötigen Nährsalzmenge erforderlich ist. Im äußeren und inneren Bau gleichen viele Hygrophyten in mancher Hinsicht den Wasserpflanzen, und zwar um so mehr, an je feuchteren Standorten sie gedeihen.
Wir finden bei den Hygrophyten mannigfaltige Einrichtungen, die der Transpiration günstig sind: Ausbildung großer und dünner Blattflächen, schwache Ausbildung der Kutikula, Verlegung der Stomata auf exponierte Vorsprünge, wo sie über die Epidermis emporgehoben sind, schließlich Baueigentümlichkeiten des Blattes, die es, wie STAHL zeigte, nach Regengüssen möglichst schnell wieder trocken werden lassen. Eine vorgezogene Spitze, mit der die Spreiten oft abschließen, die Träufelspitze, oder die Unbenetzbarkeit des Blattes durch Wachsüberzüge erleichtern das Abfließen des Wassers; eine Samtoberfläche, durch Papillen bedingt, breitet Wassertropfen kapillar zu einer äußerst dünnen, schnell verdunstenden Schicht aus. Ferner hebt vielleicht, nach STAHL, die Ausbildung Lichtstrahlen absorbierender Farbstoffe, die Buntblättrigkeit, durch Wärmeabsorption die Temperatur des Blattes über die Umgebung, so daß die Transpiration am Tage auch noch in dampfgesättigter Luft unterhalten werden kann. In der Abgabe tropfbar flüssigen Wassers, (der sog. Guttation) aus wasserausscheidenden Organen der Blätter, den Hydathoden, besitzen manche dieser Pflanzen vielleicht ein Mittel, auch nach völliger Hemmung der Transpiration noch genügend Wasser abzugeben. Diese Organe sind entweder Drüsenhaare oder -flächen, die Wasser sezernieren, oder Wasserspalten, aus denen Wasser von den Leitbündeln her ausgepreßt wird (vgl. Fig. 134).
b) Anpassungen an physiologisch trockene Standorte oder an trockene Klimate, Xerophyten[100], [104]. Dagegen bedürfen die Landpflanzen um so mehr Einrichtungen, die auf Hemmung der Wasserabgabe berechnet sind, in je trockenerer Luft ihre Sprosse wachsen und je schwerer zugleich ein hinreichend schneller und großer Wassernachschub möglich ist. Denn die Einschränkung der Transpiration, die unter ungünstigen Verhältnissen auch in allen anderen Klimaten durch Verschluß der Stomata bewirkt wird, würde für Pflanzen besonders trockener Klimate und Standorte nicht ausreichen. Austrocknungsfähig aber (vgl. S. 189), wie Flechten und Moose, sind nur wenige Kormophyten; die meisten werden schon durch starkes Welken getötet.
Pflanzen mit solchen Einrichtungen zur Hemmung der Wasserabgabe nennt man Xerophyten (Xerophile). Man erkennt sie schon an ihrem Habitus. Die Summe von morphologischen Eigenschaften, die solche Einrichtungen bilden, fassen wir in dem Worte „Xerophytenbau“ (Xeromorphie) zusammen. Besonders extreme Xerophyten sind natürlich viele Wüstenpflanzen, die Gewächse trockener Felsen und viele Epiphyten (vgl. S. 156).
Sehr auffallend ist aber, daß mehr oder weniger ausgeprägter Xerophytenbau auch bei Pflanzen von ganz anderer Lebensweise vorkommt, wo er gar nicht oder wenigstens nicht auf den ersten Blick verständlich erscheint, so bei den Pflanzen der Hochgebirge und des hohen Nordens, bei vielen Sumpfpflanzen, bei den Pflanzen des Meeresstrandes, namentlich den Salzpflanzen (Halophyten) (Fig. 192), selbst solchen, die, wie die Mangrovegewächse tropischer Küsten, direkt im Wasser wachsen. Wenn auch hier noch manche Frage ungelöst ist, wird man doch annehmen dürfen, daß die Mehrzahl dieser Gewächse wenigstens zeitweise in Gefahr ist, mehr Wasser durch Transpiration abzugeben, als sie aus dem Boden aufzunehmen oder in die Blätter zu schaffen vermögen. Wenn sie auch in verhältnismäßig feuchten Böden leben, so scheinen diese für sie doch, zum mindesten vorübergehend, mehr oder weniger physiologisch trocken zu sein, d. h. die Wasseraufnahme zu erschweren.
Es gibt anatomische und morphologische Einrichtungen, die die Transpiration herabsetzen. Ein Teil von ihnen mag zugleich als Schutzmittel gegen zu starke Lichtbestrahlung oder gegen zu hohe Erwärmung anzusehen sein.
Anatomische Einrichtungen, die die Transpiration einschränken, sind: Verstärkung der Kutikula und der kutinisierten Epidermisaußenwände; verschleimte Epidermiszellen; Ausbildung von Wachs-, Harz- oder Kalküberzügen, bei Stämmen oder Wurzeln auch von Korkschichten; Verringerung der Spaltöffnungszahl; Verengung der Spaltöffnung oder ihre Verstopfung durch Harz- oder Wachsmassen; Einsenkung der Spaltöffnungsapparate einzeln in Vertiefungen der Epidermis (Fig. 188) oder in größerer Zahl in besondere krugförmige Vertiefungen der Blattunterseite, die nur durch enge Kanäle nach außen münden, wie beim Oleander, ferner ihre Überwölbung durch Nachbarzellen. Endlich werden als Schirm gegen die Sonnenstrahlen Filzhaare, Stern- und Schuppenhaare ausgebildet, die sich frühzeitig mit Luft füllen und dadurch der Pflanze eine weiße oder graue Farbe verleihen (Edelweiß, Proteaceen Australiens, Ölbaum). Oder die immergrünen Blätter sind klein, dicklich, lederartig und verhältnismäßig saftarm (Hartlaubgewächse, Sklerophyllen des Mediterrangebietes, z. B. Ölbaum, Myrte). Bezeichnend für die Blätter ausgesprochener Sklerophyllen (Fig. 191) ist die Kleinheit der Interzellularen im Mesophyll, das meist sehr kleinzellig ist und vielfach kein Schwammparenchym enthält, sondern oft nur aus Palisadenzellen besteht oder doch zum mindesten ober- und unterseits mehrere typische Schichten solcher Zellen aufweist, so daß die Blätter vieler Sklerophyllen bilateral symmetrischen Bau besitzen. Einige Xerophyten verzichten aber auf jeden Transpirationsschutz durch anatomische Charaktere, weil sie durch ihren hochkonzentrierten Zellsaft zu einer Wasseraufnahme auch aus verhältnismäßig trockenem Boden befähigt sind (S. 195).
Meist verbinden sich diese Einrichtungen mit morphologischen Besonderheiten des äußeren Baues, die ebenfalls die Transpiration herabsetzen.
Viele kleinblättrige Xerophyten zeichnen sich durch Polsterwuchs aus (Polsterpflanzen, z. B. viele Alpenpflanzen, Fig. 189), wodurch schon die Transpiration eingeschränkt und zugleich ein Schutz gegen zu starke Bestrahlung gewährt wird.
Ein sehr wirksamer Transpirations- und Lichtschutz wird durch Einstellung der Blattflächen in die Vertikalebene erzielt, vor allem bei neuholländischen Akazien und Myrtaceen; bei den Akazien verbunden mit Reduktion der eigentlichen Blattflächen und blattförmiger Ausbildung der Blattstiele (Phyllodien, Fig. 140 und Fig. 190). Auch unter den einheimischen Pflanzen findet sich ähnliche Einstellung der Blätter: so z. B. bei der als Kompaßpflanze bekannten Lactuca scariola, die sämtliche Blätter vertikal, und zwar in eine Nord-Süd-Ebene stellt. An solchen Blättern gleiten bei höchstem Stand der Sonne die Lichtstrahlen mehr oder weniger seitlich vorbei. Dadurch wird vielleicht eine übermäßige Erwärmung und Transpiration verhindert.
Fig. 188. Querschnitt durch die Epidermis von Aloë nigricans. i Innere, nicht kutinisierte Verdickungsschicht. Vergr. 240. Nach STRASBURGER.
Fig. 189. Raoulia mamillaris (Composite) von Neuseeland. Polsterförmiger Zusammenschluß der Einzelpflanzen. Aus SCHIMPER, Pflanzengeographie.
Sehr häufig werden die Blattspreiten reduziert. Bei den Steppengräsern geschieht dies durch Einrollung ihrer freien Oberfläche (Fig. 192); bei Ericaceen, Genisteen, Cupressaceen und gewissen habituell ihnen ähnlichen Veronica-Arten Neuseelands (vgl. auch Fig. 193) durch Verkleinerung der Spreiten; bei Kakteen, baumartigen Euphorbia-Arten, einigen Asclepiadaceen durch völliges Schwinden der Spreiten. Mit der Verkleinerung der Blätter muß aber außer der Transpiration auch die Assimilation des Kohlenstoffs abnehmen; so sehen wir zur Kompensation des Verlustes Chlorophyllparenchym in den Stengeln dieser Pflanzen auftreten. In diesem Falle sind die Sproßachsen grün gefärbt; so z. B. bei Sarothamnus scoparius, der an seinen langen, rutenförmigen Zweigen nur vereinzelte hinfällige, lanzettliche Blättchen entwickelt (Rutengewächse, Sklerokaulen).
Fig. 190. Acacia marginata mit senkrecht gestellten Phyllodien. Aus SCHIMPER, Pflanzengeographie.
Fig. 191. Querschnitt des Blattes der Capparidacee Capparis spinosa var. aegyptiaca. Vergr. 40. SCHIMPER nach VOLKENS.
Fig. 192. Blattquerschnitte des Grases Stipa capillata. Oben ein Blatt in geschlossenem Zustande, unten die Hälfte eines offenen Blattes. U Spaltöffnungslose Unterseite. O Oberseite mit Spaltöffnungen (S). C Chlorophyllhaltiges Assimilationsgewebe. 30fach vergr. Nach KERNER V. MARILAUN.
Oft geht Hand in Hand mit einer Reduktion der Blätter eine Abflachung und blattähnliche Ausbildung der grünen Sproßachsen, die alsdann weit vollkommener als die rutenförmigen die Assimilationsfunktionen des Blattes übernehmen können (Fig. 194, 195), aber natürlich zugleich auch wieder stärker transpirieren. Solche blattartige Sprosse werden als Flachsprosse, Kladodien oder Phyllokladien bezeichnet. GOEBEL schlägt vor, jene Flachsprosse, die begrenzt wachsen und dadurch besonders blattähnlich werden, Phyllokladien, andere verbreiterte Sproßachsen Kladodien zu nennen. Ein lehrreiches Beispiel für Phyllokladien ist Ruscus aculeatus, ein kleiner xerophytischer Strauch des Mittelmeergebietes, der an seinen Zweigen (Fig. 194) in den Achseln schuppenförmiger Blätter (f) breite, in eine scharfe Spitze auslaufende Phyllokladien (cl) trägt, die durchaus den Eindruck von Blättern machen. Ihrer Oberfläche entspringen manchmal in der Mittellinie, annähernd in ihrer halben Länge, aus der Achsel eines schuppenförmigen Blattes eine bis zwei Blüten. Diese Phyllokladien sind ein sehr schönes Beispiel für Analogie von Organen: sie sehen aus und funktionieren wie Blätter, sind aber Sproßachsen, wie ihre geschilderten morphologischen Eigenschaften lehren. Eine blattartige Abflachung des gesamten massig entwickelten Stammes, also Kladodienbildung, mit Verschmälerung an den Verzweigungsstellen, zeigen uns die bekannten Opuntien (Fig. 195).
Fig. 193. Salicornia herbacea (Chenopodiacee), eine ausgesprochene Salzpflanze. Aus SCHIMPER, Pflanzengeographie.
Fig. 194. Zweig der mediterranen Liliacee Ruscus aculeatus. f Blatt, cl Phyllokladium, bl Blüte. Nat. Größe. Nach SCHENCK.
Fig. 195. Opuntia monacantha Haw. Kladodien mit Blattdornen, Blüte und Früchten. Nach SCHUMANN. Etwa fünfmal verkleinert.
Besonderes Interesse bieten schließlich einige Xerophyten, bei denen nicht allein die Blätter, sondern auch die Sproßachsen ganz schwinden. Dann übernehmen die abgeplatteten, grünen Wurzeln, aus denen die Vegetationsorgane allein bestehen, die Funktionen der Blätter (so bei der epiphytischen Orchidee Taeniophyllum, Fig. 196).
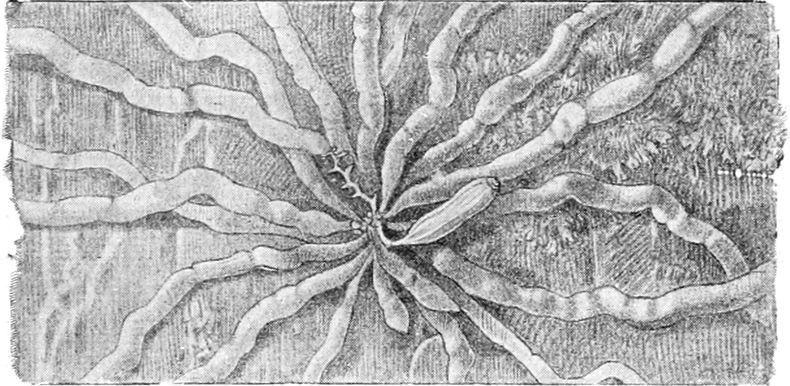
Fig. 196. Taeniophyllum Zollingeri. Xerophytische Orchidee ohne Blätter und ohne Sproßachsen, mit grünen, abgeflachten Wurzeln. Nat. Gr. Aus SCHIMPER, Pflanzengeographie; nach WIESNER.
Mit dem großen Reichtum an Sklerenchym, der für die Sprosse vieler Xerophyten bezeichnend ist und ihre nötige Festigkeit auch im Falle schwächeren oder stärkeren Welkens sicherstellt, steht oft in Zusammenhang die Ausbildung von Dornen, die aber auch bei einigen nicht xerophytisch gebauten Pflanzen unserer Klimate vorkommen. Das sind sehr spitze, verholzte und infolgedessen starre, verzweigte oder unverzweigte, pfriemförmige Gebilde, die durch Umwandlung von Blättern oder Blatteilen (Blattdornen) oder von Sprossen (Sproßdornen) oder in sehr seltenen Fällen von Wurzeln (Wurzeldornen) entstanden sind. Beim Sauerdorn (Berberis vulgaris) wird das ganze Blatt an den Hauptsprossen in einen meist dreistrahligen Dorn umgestaltet; die Seitentriebe, die entwickelte Laubblätter tragen, stehen in den Achseln dieser Dornen. Auch bei den Kakteen (Fig. 195) gehen die Dornen aus Blattanlagen hervor. Bei der Robinie (Fig. 197) und bei manchen sukkulenten Euphorbien entwickeln sich die beiden Nebenblätter zu Dornen. Sproßdornen treten bei Prunus spinosa, Crataegus oxyacantha und den in unseren Gärten häufig kultivierten Gleditschien (Fig. 198) auf. Bei Colletia cruciata, einer strauchartigen amerikanischen Rhamnacee, die an trockenen, sonnigen Standorten wächst, sind alle Sproßachsen domartig ausgebildet, zugleich etwas abgeflacht und grün; sie ersetzen die bald abfallenden, kleinen Blätter. Wurzeldornen kommen bei einigen Palmen am Stamme vor (z. B. Acanthorrhiza) und bei Myrmecodia unter den Dikotylen. Der Dornsproß ist vor allem vielen Xerophyten der Wüsten und Steppen eigentümlich.
Fig. 197. Stammstück von Robinia Pseudacacia mit dem unteren Teile eines gefiederten Blattes und den zugehörigen, in zwei Dornen verwandelten Nebenblättern n. g Gelenkpolster. 1⁄2 nat. Gr. Nach SCHENCK.
Fig. 198. Sproßdorn von Gleditschia triacanthos. 1⁄2 nat. Gr. Nach SCHENCK.
Oft besitzen blattlose Xerophyten angeschwollene Blätter oder Stämme: so die grünen säulenförmigen, prismatischen oder zylindrischen, keulen- oder kopfförmigen Euphorbien und Kakteen. Viele Xerophyten begnügen sich nämlich nicht damit, die Abgabe von Wasser stark einzuschränken, sondern speichern Wasser in besonderen Geweben während der Tage, wo es zur Verfügung steht, für die Zeiten der Not. Solches Wassergewebe zeichnet sich bei typischer Ausbildung durch große, chlorophyllfreie Zellen aus, die fast nur aus der riesigen Vakuole bestehen. Im Grunde genommen ist jede Epidermiszelle ein Wasserspeicher. Manchmal nehmen aber die Epidermiszellen ungewöhnliche Dimensionen an, so daß sie die Hauptmasse eines Blattes ausmachen, oder teilen sich auch parallel zur Oberfläche und werden zu einem ein- bis mehrschichtigen (äußeren) Wassergewebe (verschiedene Piperaceen, Begoniaceen, Ficus-Arten, Tradescantia). Sehr häufig ist aber das Wassergewebe mehr zentral gelegen (inneres Wassergewebe). Wo Wassergewebe sehr mächtig ausgebildet sind, bekommen die betreffenden Organe dadurch einen fleischig-saftigen Charakter. Daher nennt man solche Pflanzen „Sukkulenten“. Bei gewissen Umbelliferen, Cucurbitaceen, Kompositen, Asclepiadaceen, ferner Angehörigen der Gattungen Pelargonium und Oxalis der Steppen und Wüsten sind Wurzeln zu Wasserspeichern ausgebildet. Häufiger findet man Blattsukkulenten: Sedum, Sempervivum, Agave, Aloë, Mesembryanthemum; oder Stammsukkulenten: Kakteen, Euphorbia-Arten, Stapelia und andere Asclepiadaceen (Fig. 195, 199), Kleinia unter den Kompositen. Ganz besonders bezeichnend für dürre Gegenden in der neuen Welt sind die kugelförmigen oder säulenartigen Kakteen, in der alten die säulenförmigen oder kandelaberartigen Euphorbien und Asclepiadeen, die gewissen Kakteen zum Verwechseln ähnlich sehen. Die Ähnlichkeit in der Lebensweise hat hier aus ganz entfernt stehenden Pflanzen fast übereinstimmende Gestalten geschaffen (vgl. Fig. 199 a–c), eine Erscheinung, die außerordentlich häufig wiederkehrt (Konvergenz). Im Extrem nähert sich der Stamm oder das Blatt der Sukkulenten der Kugel, nimmt also bei gegebenem Volumen die kleinste Oberfläche an, wodurch die Transpiration natürlich ganz besonders stark vermindert wird: NOLL hat berechnet, daß die Verdunstung eines Kugelkaktus 600mal geringer ist als die einer gleichschweren Schlingpflanze (Aristolochia sipho). Solche und ähnliche Sukkulentenstämme sind ausgesprochene Sproßknollen, d. h. sehr geräumige Speicherorgane für Wasser.
Fig. 199. Stammsukkulenten: a Stapelia grandiflora (Asclepiadacee), b Cereus Pringlei (Cactacee), c Euphorbia erosa (Euphorbiacee). 1⁄5 nat. Gr.
c) Anpassungen an wechselfeuchte Klimate. Tropophyten[100]. In einigen dauernd feuchtwarmen Tropengegenden ist das Klima jahraus jahrein dem Pflanzenwachstume nahezu gleich günstig. Überall sonst aber, wo eine ausgesprochene Klimaperiodizität, ein regelmäßiger Wechsel zwischen einer dem Pflanzenwachstum günstigen Vegetationsperiode und einer ihm mehr oder weniger schädlichen Jahreszeit (Ruheperiode) besteht, die bald als trockne, bald als kalte Zeit (Winter) ausgebildet sein kann, entspricht diesem Wechsel eine auffallende Periodizität in den Lebensvorgängen der Pflanzen. Darauf ist es auch zurückzuführen, daß viele Gewächse solcher Klimate in mancher Hinsicht anders gebaut sind als diejenigen gleichmäßig feuchtwarmer Tropengegenden. Nur solche Formen werden ja dort gedeihen können, die in irgendeiner Weise den in der ungünstigen Jahreszeit drohenden Gefahren gewachsen sind. Letztere bestehen aber in allererster Linie auch da, wo ein sehr kalter Winter mit einem Sommer abwechselt, in einem Tode durch Vertrocknung während der in den Frostperioden sehr trockenen Winterszeit. Ein solcher Tod droht freilich extremen Xerophyten nicht, weil ihre Standorte auch in der günstigen Jahreszeit dauernd oder zeitweilig sehr trocken sind; sie können oft ohne weiteres die Trockenperiode überdauern. Anders steht es dagegen um die Gewächse, die in der günstigen Jahreszeit nicht an trockenen Standorten gedeihen und nicht xerophytischen Bau besitzen. Zunächst sind ihre Transpirationsorgane, die Blätter, in der Trockenzeit gefährdet. So sehen wir denn als sehr auffallende Eigentümlichkeit dieser Gewächse wechselfeuchter Klimate, daß vor oder zu Beginn der schlechten Zeit die Blätter von den Sproßachsen abgeworfen werden (laubabwerfende, sommergrüne Holzgewächse) oder sogar mit einem Teil der Sproßachsen absterben (sommergrüne Kräuter). Das genügt aber vielfach noch nicht, die Pflanze vor dem Vertrocknungstode und die Art vor dem Aussterben zu bewahren; denn auch die embryonalen Gewebe, die zu Beginn der guten Jahreszeit die verloren gegangenen Teile ersetzen müssen, würden in der Trockenzeit vertrocknen, wenn sie nicht irgendwie besonders geschützt würden.
Solche Schutzeinrichtungen, bestimmt die Pflanze über eine vegetationsfeindliche Zeit hinüber zu retten, kennzeichnen die Gewächse wechselfeuchter Klimate, sofern sie nicht ausgesprochene Xerophyten sind, so auch die meisten Kormophyten unserer Heimat. In der günstigen Jahreszeit können sie einen wirksamen Transpirationsschutz oft ganz entbehren und insofern Hygrophyten gleichen; in der ungünstigen aber sind sie den extremsten Xerophyten ähnlich. Diesem Wechsel im Aussehen verdanken die Tropophyten ihren Namen.
Entsprechend ist auch der anatomische Bau der ausdauernden Teile xerophil, der nur in der feuchten Jahreszeit vorhandenen dagegen hygrophil.
Die Gewächse wechselfeuchter Klimate können ausdauernde Holzgewächse: Bäume und Sträucher, ausdauernde Krautgewächse (Perenne) und einjährige Kräuter (Annuelle) sein. Jede dieser Gruppen hat ihre besonderen Schutzeinrichtungen gegen Vertrocknung ihrer Transpirationsflächen und ihrer embryonalen Gewebe.
1. Die Holzgewächse wechselfeuchter Klimate werfen mit Ausnahme einiger weniger immergrüner, deren Blätter Xerophytenstruktur besitzen (z. B. Koniferen, Ilex), am Ende der Vegetationsperiode das Laub ab und schließen ebenso wie die erwähnten Immergrünen im Gegensatze zu vielen, wenn auch nicht allen tropischen Formen, ihre Sproßvegetationspunkte während der Trocken- oder Winterzeit in schützende Gehäuse, in Winterknospen ein (Fig. 200).
Fig. 200. Winterknospen der Rotbuche (Fagus silvatica). kns Knospenschuppen. Nat. Gr. Nach SCHENCK.
Diese Gehäuse werden meist von fest zusammenschließenden Knospenschuppen, Niederblättern, gebildet. Manchmal werden dazu ganze Primordialblätter verwendet, die in ungegliedertem Zustande verblieben sind. Am häufigsten aber gehen die Schuppen aus dem Blattgrunde hervor, der sich entsprechend vergrößert und ausgestaltet. Das Oberblatt kommt alsdann entweder gar nicht zur Entwicklung oder sitzt in mehr oder weniger reduziertem Zustande am Scheitel der Knospenschuppe. Eine im Frühjahr austreibende Winterknospe der Roßkastanie (Aesculus hippocastanum) zeigt dies unmittelbar; denn während ihre äußeren Knospenschuppen an den Spitzen kaum etwas von einem Oberblatte erkennen lassen, tragen die inneren Knospenschuppen oft schon deutlich eine kleine Blattspreite. In anderen Fällen sind die Knospenschuppen ihrem Ursprunge nach Nebenblätter, gehören also auch dem Blattgrunde an (so bei der Eiche). Nicht selten ist auch das Deckblatt an dem Schutz seiner Achselknospe beteiligt, indem sein Blattgrund (oder die Basis seines Blattstieles) nach dem Blattfall am Sproß sitzen bleibt und kappenförmig die Winterknospe deckt. Bei Robinia ist dieser Blattgrund die einzige Schutzhülle der Winterknospe.
Die Knospenschuppen werden lederartig dick und hart und färben sich gewöhnlich braun. Kork- und Haarüberzüge, Harz-, Gummi- und Schleimausscheidungen sowie eingeschlossene Luftschichten machen sie zu sehr wirksamen Schutzorganen der Knospen gegen Austrocknung. Der Abscheidung von Harz usw. dienen eigenartig gestaltete Haargebilde, die Leim- und Drüsenzotten oder Kolleteren (vgl. Fig. 56). So scheiden solche auf den Deckschuppen sitzenden Drüsenzotten in Winterknospen vieler unserer Bäume, z. B. der Roßkastanie, ein Gemenge von Gummi und Harz ab, das durch Zersprengung der Kutikula frei wird und sich zwischen die Deckschuppen ergießt und sie verklebt. Wenn die Knospen im Frühjahr aufbrechen, so werden die Knospenschuppen gewöhnlich abgeworfen und bedecken alsdann den Boden. An den Jahrestrieben der Bäume sind die untersten Internodien, die zwischen den Knospenschuppen lagen, besonders kurz. Sie lassen die dicht gedrängten Schuppennarben und so die Grenzen der aufeinanderfolgenden Jahrestriebe erkennen.
2. Die perennierenden Kräuter (Stauden) wechselfeuchter Klimate opfern nicht allein die Blätter, sondern auch zum mindesten die Teile der Laubsprosse, welche höher in die Luft ragen und der Vertrocknung ausgesetzt sind, mit den daran sitzenden Knospen. Sie überwintern mit oberirdischen Knospen, die dicht über der Erde liegen, wo sie durch Schnee oder fallendes Laub gegen Vertrocknung geschützt werden, oder „ziehen ganz ein“ und überwintern mit unterirdischen Knospen (Geophyten), die in noch viel wirksamerer Weise, von feuchter Erde umgeben, vor Vertrocknung und zugleich vor dem Erfrieren bewahrt werden können.
Wo oberirdische Erneuerungsknospen vorhanden bleiben, sitzen sie entweder an oberirdischen, niederliegenden Sproßstücken (z. B. Saxifraga, Stellaria Holostea, Thymus u. a.) oder an unterirdischen Sprossen (Rhizomen), so bei unzähligen Pflanzen Mitteleuropas, z. B. den ausdauernden Rosettenpflanzen, wie Bellis, Taraxacum, Primula; den Zweijährigen oder Biennen, die mit einer Blattrosette überwintern, wie z. B. Verbascum, Digitalis und vielen anderen. Wie bei den Geophyten können auch bei solchen Stauden unterirdische Speicherorgane für organische Reservestoffe vorkommen (vgl. S. 153).
Bei den Kräutern mit unterirdischen Überwinterungsknospen, den Geophyten[105], haben die Teile, die die Knospen tragen, entsprechend ihrem Leben im Boden und ihren besonderen Aufgaben einen eigenartigen Bau. Es sind metamorphosierte Sprosse: Wurzelstöcke (Rhizome), Sproßknollen, Zwiebeln oder metamorphosierte Wurzeln (Wurzelknollen). Die im Frühjahr austreibenden unterirdischen Erneuerungsknospen brauchen organische Nahrungsstoffe, und zwar um so mehr, je länger der Weg ist, den sie bis zur Bodenoberfläche zurückzulegen haben. Diese Nahrungsstoffe werden in der vorausgehenden guten Zeit gebildet, ehe die Luftsprosse absterben. Da das Speicherungsvermögen mit dem Volumen wächst, so wird es begreiflich, daß die unterirdischen, fast nur aus Speicherparenchym bestehenden Überwinterungsorgane bei vielen solchen Gewächsen angeschwollen, dick sind. Solche Speicherorgane können Sproßachsen, Blätter oder Wurzeln sein. Sie entleeren sich bei Beginn der guten Jahreszeit ihrer Bestimmung gemäß, gehen danach, mit Ausnahme vieler Rhizome, meist zugrunde und werden oft in sehr eigenartiger Weise durch neue ersetzt. Speicherorgane von Pflanzen sind es, die wegen ihres Reichtums an ausnutzbaren organischen Reservestoffen vielen Tieren und uns Menschen als besonders wertvolle vegetabilische Nahrungsmittel dienen.
a) Die Wurzelstöcke und sehr viele Sproßknollen sind unterirdische farblose Sprosse. Jene sind verhältnismäßig dünn oder dick, mit langen oder kurzen Internodien (Fig. 125, 143); die Sproßknollen (z. B. die Kartoffelknollen, Fig. 201) aber sind sehr dick. Ihre Blätter (Niederblätter) sind, wie meist an den Erdsprossen, als Schuppen ausgebildet. Die Reservestoffe werden in den Sproßachsen gespeichert, weshalb diese oft angeschwollen sind. An solchen Schuppen, dem Vorhandensein regelmäßig verteilter Knospen, dem Fehlen von Wurzelhauben, endlich an ihrem inneren Bau lassen sich die Rhizome und unterirdischen Sproßknollen von Wurzeln unterscheiden. Meist sind die Rhizome, die bei manchen Pflanzen senkrecht oder schräg, bei anderen horizontal im Boden wachsen und verzweigt oder unverzweigt sind, dauernd mit Wurzeln bedeckt, während die Sproßknollen nach ihrer Bildung zunächst gewöhnlich keine Wurzeln ausbilden; doch kommen alle Übergänge zwischen Rhizomen und Sproßknollen vor.
Fig. 143 stellt den Wurzelstock von Polygonatum multiflorum dar, der auch als Beispiel eines Sympodiums (S. 111) schon angeführt wurde. Die mit c, d und e bezeichneten Stellen entsprechen den Narben der oberirdischen Triebe dreier vorausgegangener Jahre. In b ist die Basis des Stengels zu sehen, der in Blüte stand, als das Rhizom dem Boden entnommen wurde; a ist die Knospe für den nächstjährigen Trieb.
Fig. 201. Unterer Teil einer Kartoffelpflanze (Solanum tuberosum). Die mittlere dunklere Knolle ist die in die Erde gesteckte Mutterknolle, aus der sich die Pflanze entwickelt hat. 1⁄3 nat Gr. Nach der Natur mit Benutzung eines BAILLONschen Bildes. Nach SCHENCK.
Fig. 202. Zwiebel der Tulpe (Tulipa Gesneriana) im Längsschnitt. zk Achse, zs Zwiebelschuppen, v Terminalknospe, k Anlage einer jungen Zwiebel, w Wurzeln. Nat. Gr. Nach SCHENCK.
Die Knollen der Kartoffelpflanze, von Colchicum autumnale oder Crocus sativus sind Beispiele für unterirdische Sproßknollen. Die Knollen der Kartoffelpflanze (Fig. 201) oder des Helianthus tuberosus sind unterirdische Sprosse mit angeschwollenen Achsen und reduzierten Blättern. Sie entstehen in Mehrzahl aus den angeschwollenen Enden verzweigter unterirdischer Triebe, Ausläufer (Stolonen), und dienen gleichzeitig der Vermehrung der Mutterpflanze. Die an jeder Kartoffelknolle sichtbaren, regelmäßig verteilten Vertiefungen bergen Achselknospen (die Augen), die bestimmt sind, im kommenden Jahr auszutreiben. Die kleinen schuppenförmigen Blätter, in deren Achseln die Augen entstehen, sind nur an ganz jungen Knollen kenntlich. Nach Ausbildung der Knollen geht die Mutterpflanze zugrunde; die in jenen angehäuften Nahrungsstoffe dienen zum Aufbau der aus den Augen sich entwickelnden Triebe.
Bei den Herbstzeitlosen (Fig. 812) entsteht die neue Knolle an der alten, und zwar aus einer Achselknospe seitlich an ihrer Basis, beim Safran (Fig. 821) aus einer Achselknospe nahe am Scheitel; daher sitzt bei den Herbstzeitlosen die jüngere Knolle seitlich neben der alten, während sie beim Safran ihr aufgesetzt erscheint.
Auch der Rettich und das Radieschen sind (unterirdische) Sproßknollen, allerdings nur aus einem Teil eines einzigen Internodiums, nämlich des hypokotylen Stengelgliedes der Keimpflanzen. An der Bildung dieser Knollen nimmt aber auch der oberste Teil der Keimwurzel teil.
Eine oberirdische Sproßknolle, die aus vielen Internodien eines Laubsprosses hervorgeht und reich an organischen Reservestoffen ist, ist z. B. der Kohlrabi.
b) Eine Zwiebel (z. B. die Küchen-, Tulpen-, Hyazinthenzwiebel) ist ein unterirdischer Sproß, dessen Achse scheibenförmig (Fig. 202 zk) abgeflacht ist und dessen fleischig angeschwollene Blätter, die Zwiebelschuppen (zs), mit organischen Reservestoffen angefüllt sind. Aus dem Vegetationspunkt der Achse entwickelt sich der oberirdische Trieb. Eine neue Zwiebel geht aus einer Knospe (k) in der Achsel einer Zwiebelschuppe hervor.
c) Andere krautige Perennen wechselfeuchter Klimate wieder (z. B. die Georginen und viele Orchideen) bilden Wurzelknollen aus (Fig. 203, 204). Sie ähneln den Stammknollen, lassen ihre Wurzelnatur aber an ihren Wurzelhauben, dem Fehlen von Blattanlagen und dem inneren Bau erkennen. Eine knollige Hauptwurzel heißt Rübe (so bei der Mohrrübe, Zuckerrübe; beides Bienne mit oberirdischen Erneuerungsknospen).
Fig. 203. Wurzelknollen der Georgine (Dahlia variabilis). Bei s die unteren Teile der abgeschnittenen Stengel. 1⁄5 nat. Gr. Nach SCHENCK.
Fig. 204. Wurzelknollen von Orchis, etwas schematisiert. t′ die alte, t″ die neue Wurzelknolle dieses Jahres. b Blütensproß. k Die Achselknospe aus dem Deck- (Nieder-)Blatt s daran, an der die neue Knolle t″ entstanden ist. r Adventivwurzeln, unverdickt. n Die Narbe an der alten Knolle zeigt die Stelle, womit die alte Knolle an ihrem Muttersproß befestigt war. 3⁄4 nat. Gr.
Eigenartig sind die Wurzelknollen der Orchideen aufgebaut: sie sind eiförmig (Fig. 204) oder handförmig gestaltet (Orchis latifolia) und entstehen stets nur aus einer Wurzel, die handförmigen durch deren Gabelung. Man findet miteinander verbunden eine ältere (t′) und eine jüngere Knolle (t″). Die ältere hat bereits einen Blütensproß (b) getragen und ist im Schrumpfen begriffen. Die jüngere ist an der Basis dieses Sprosses in der Achsel eines Niederblattes (s) an dessen Achselknospe (k) entstanden, und zwar durch Anschwellung einer sproßbürtigen Wurzel dieser Knospe. Unverzweigte dünne Wurzeln entspringen über den Knollen aus der Stengelbasis.
Viele Zwiebeln, Knollen und Rhizome haben eine spezifische Tiefenlage, die freilich je nach der Beschaffenheit des Bodens variieren kann. So liegen z. B. die Rhizome von Paris in 2–5 cm, die von Arum bei 6–12, von Colchicum bei 10–16, von Asparagus officinalis bei 20–40 cm Tiefe. Die Samen keimen aber auf oder dicht unter der Erde. Die Erdsprosse der jungen Pflanzen müssen also tiefer und tiefer in die Erde eindringen. Dies geschieht zum Teil durch die Zuwachsbewegung des Stammes (vgl. S. 305), zum Teil aber auch durch kontraktile Wurzeln (Zugwurzeln). Bei Lilium z. B. (Fig. 205) sind alle Wurzeln stark kontraktil. Ihre Tätigkeit ist am besten aus Fig. 205, 3 zu erkennen, wo die beiden untersten Wurzeln durch ihre Kontraktion die Zwiebel so verlagert haben, daß die höheren an ihrer Basis im Bogen gekrümmt worden sind. Hat die Zwiebel die richtige Tiefe erlangt, so wird sie durch Wurzelkontraktion jährlich nur um so viel tiefer gezogen, als sie durch Wachstum des Vegetationspunktes aufsteigt. In anderen Fällen sind nicht alle Wurzeln kontraktil (Arum), oder es sind überhaupt nur sehr wenige oder gar nur eine einzige Kontraktionswurzel ausgebildet (Crocus, Gladiolus, Oxalis elegans). Handelt es sich bei den bisher geschilderten Fällen durchweg um Seitenwurzeln, die die richtige Tiefenlage sichern, so kann z. B. bei manchen Rosettenpflanzen die Hauptwurzel durch andauernde Kontraktion während ihres sekundären Dickenwachstums dafür sorgen, daß der Vegetationspunkt jedes Jahr um so viel durch die Wurzel in die Tiefe gezogen wird, wie er durch Wachstum in die Höhe rückt, so daß die Rosette stets dem Erdboden anliegen bleibt (Gentiana lutea).
Fig. 205. 1–4 Keimung von Lilium Martagon. Verkleinert. Die horizontale Linie stellt die Erdoberfläche vor; die vertikalen Marken haben Zentimeterabstand. 1 Keimling mit Samen; 2 Keimpflanze am Ende des 2. Jahres; 3 junge Pflanze noch im Absteigen begriffen; 4 ausgewachsene Pflanze in der Normaltiefe; 5 Colchicum autumnale (etwas verkleinert); punktiert ist die ursprüngliche Lage der Knolle, ausgezeichnet die neue Lage, die durch Wurzelkontraktion herbeigeführt wurde; 6 Kontrahierte Wurzel von Lilium. Vergr. 6fach. Nach RIMBACH.
3. Die annuellen Kräuter schließlich geben für die schlechte Jahreszeit ihre Vegetationsorgane überhaupt auf: sie überdauern diese in der denkbar sichersten Weise mit ihren trockenen Samen, in denen ebenfalls Reservestoffe reichlich gespeichert sind. —
Je gleichmäßiger günstig das Klima während des ganzen Jahres für die Pflanzenwelt ist (wie in feuchten Gebieten der Tropen), um so mehr überwiegen immergrüne Holzgewächse in der Vegetation, der freilich immergrüne perennierende Kräuter, oft auch mit Erdsprossen, nicht völlig fehlen. Umgekehrt, je extremer die Klimaperiodizität ausgebildet ist, wie z. B. in den Steppen mit schroffer und sehr langer Trockenzeit oder in Klimaten mit harten Wintern, um so größer wird in der Vegetation der Prozentsatz an Tropophyten mit hochgradigen Schutzeinrichtungen und bei den Kräutern an Geophyten und Annuellen. Letztere treten aber in Gebieten mit sehr kurzen und kalten Vegetationsperioden, z. B. im Hochgebirge und in der Arktis, wieder stark zurück.
b) Anpassungen an den Lichtgewinn.[100].
Je üppiger sich durch die Gunst des Klimas die Vegetation entfaltet, um so riesenhaftere Pflanzenformen treten uns in ihr entgegen. In den tropischen Regenwäldern sind, wie eben schon erwähnt, neben wenigen niedrigen immergrünen Kräutern kleinere und größere immergrüne Sträucher ausgebildet, die wieder von zum Teil riesigen ebensolchen Bäumen (vgl. dazu auch S. 120) überschattet werden. Je höher die Pflanzengestalten des Waldes sind, um so mehr direktes Sonnenlicht wird von ihren Blättern aufgefangen, das kleineren Pflanzenformen verloren geht.
Die Kutikula der Blätter solcher Tropenbäume ist oft besonders glatt. Sie wirft einen Teil des Sonnenlichtes zurück, wodurch die Glanzlichter entstehen, die für das Laub der Tropen bezeichnend sind. Das ist vielleicht eine Schutzeinrichtung gegen zu starke Bestrahlung. Andere Schutzmittel gegen zu starke Bestrahlung wurden bei Besprechung der Xerophyten auf S. 145 ff. erwähnt.
Die kleinen und niedrigen Schattenpflanzen der Urwälder und auch unserer Wälder sind angepaßt, die Kohlensäure mit oft großen Blattspreiten in auffallend schwachem Lichte noch hinreichend zu assimilieren.
Im Kampfe um das Licht sind außer Bäumen und Sträuchern zwei Kormophytengruppen ganz eigenartigen Baues entstanden, die für die tropischen Regenwälder besonders bezeichnend sind, ohne bei uns ganz zu fehlen: die Kletterpflanzen (Lianen) und die Epiphyten.
1. Lianen oder Kletterpflanzen[106]. Sie vermögen ohne großen Materialaufwand, ohne säulenförmige Stämme, in kurzer Zeit ihr Laub dem Schatten, etwa des Waldes, zu entziehen und es an die Peripherie der Baumkronen oder der sonstigen Vegetationsdecke stärkerem Lichte darzubieten, indem sie mit dünnen Stengeln an fremden Sprossen, Baumstämmen und Ästen emporklettern. Die tauartigen Stämme der Lianen sind es, die den Urwald der Tropen in ein vielerorts undurchdringliches Dickicht verwandeln.
Fig. 206. Stengelstück und Blatt der Erbse (Pisum sativum). s Stengel, n Nebenblätter, b Blättchen des einfach gefiederten Blattes, r die zu Ranken ausgewachsenen Blättchen, a der Blüten tragende Achselsproß. 1⁄2 nat. Gr. Nach SCHENCK.
Fig. 207. Stengelstück der Rankenplatterbse (Lathyrus Aphaca). s Stengel, n Nebenblätter, b Blattranke. 1⁄2 nat. Gr. Nach SCHENCK.
Das Klettern wird in sehr verschiedener Weise bewerkstelligt, z. B. durch widerhakenförmige Seitensprosse oder Haare und Stacheln oder durch beides, oder durch Dornen (Spreizklimmer: Galium Aparine, Kletterrosen, Solanum Dulcamara), oder durch Wurzeln (Wurzelkletterer: Efeu, viele Araceen), oder durch Windebewegungen (Schlingpflanzen: Hopfen, Feuerbohne), oder endlich durch besondere Befestigungsorgane, die Ranken (Rankenpflanzen). Die Ranken sind fadenförmige, unverzweigte oder verzweigte Organe, die, mit Kontaktreizbarkeit (vgl. S. 312) ausgestattet, fremde Stützen umwickeln und den Sproß daran befestigen können. Bei vielen Kletterpflanzen sind es metamorphosierte Sproßachsen (Sproßranken), so beim Weinstock, wilden Wein (Fig. 208) und bei den Passionsblumen, bei anderen umgebildete Blätter (Blattranken), z. B. beim Kürbis, bei der Gurke und bei Lathyrus Aphaca (Fig. 207), wo die Funktionen der zur Ranke gewordenen Blattspreite durch die blattartig ausgebildeten Nebenblätter übernommen worden sind, oder es sind umgebildete Teile von Blattspreiten (z. B. bei der Erbse, Fig. 206), wo sich die oberen Blättchen des Fiederblattes in eine verzweigte Ranke umgewandelt haben).
Bei gewissen Arten des wilden Weins, Parthenocissus quinquefolia und P. tricuspidata (Fig. 208), sind die Rankenzweige befähigt, an ihren Enden Haftscheiben auszubilden und sich mit diesen auch an flachen Stützen zu befestigen.
Fig. 208. Parthenocissus tricuspidata. R R Sproßranken. 3⁄4 nat. Gr. Nach NOLL.
Fig. 209. Querschnitt durch den Stamm von Serjania Laruotteana. sk Teile des zersprengten Sklerenchymringes des Perizykels, l und l* Bastzonen, lg Holzkörper, m Mark. Vergr. 2. Nach STRASBURGER.
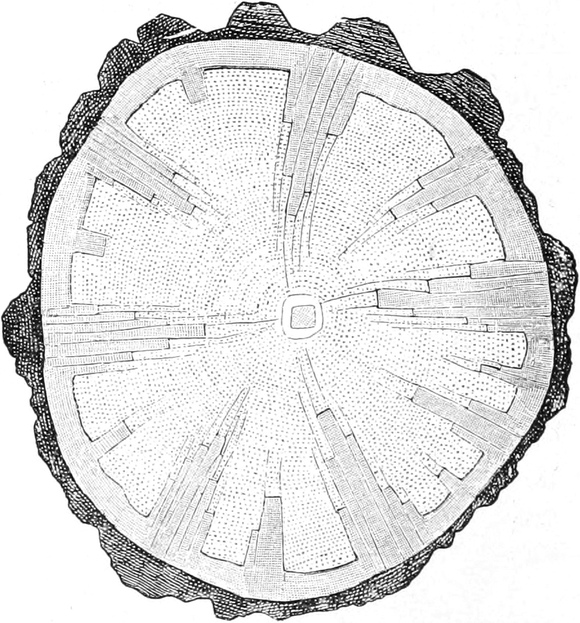
Fig. 210. Querschnitt durch den Stamm einer Bignoniacee aus Blumenau. Nat. Gr. Nach SCHENCK.
Bezeichnend für fast alle Lianen sind ihre ungewöhnlich weiten Tracheen und Siebröhren, ferner bei den tropischen Kletterpflanzen Anomalien des sekundären Dickenwachstums, wodurch gefurchte, zerklüftete oder geteilte Holzkörper entstehen, die die tauförmigen, langen und schwanken Sprosse biegungs- und torsionsfähig machen. Gefurchte Holzkörper sind bei vielen Bignoniaceen-Lianen ausgebildet. Der Kambiummantel erzeugt zuerst in gewohnter Weise nach innen Holz, nach außen Bast und bildet einen normal gebauten Holzzylinder Hierauf beginnt er aber an einzelnen Stellen nur noch wenig Holz nach innen, um so mehr Bast nach außen zu bilden. Das hat zur Folge, daß tiefe Bastkeile, die stufenförmig nach außen an Breite zunehmen, in das äußere Holz hineinreichen (Fig. 210). Das Kambium ist dabei in Längsstreifen, breitere an den Holzvorsprüngen, schmälere im Grunde der Bastkeile, zerfallen. Das fortwachsende Holz muß an diesen Bastkeilen vorbeigleiten, so daß seitlich zwischen diesen Holzteilen und den Bastkeilen keine Verbindung besteht. Mehrere Holzzylinder sind verschiedenen tropischen Lianen aus den Sapindaceen-Gattungen Serjania und Paullinia eigen (Fig. 209). Sie kommen dadurch zustande, daß die Leitbündel in den primären Stammteilen auf dem Querschnitte nicht im Kreise angeordnet sind, sondern eine ringförmige Figur mit mehr oder weniger tiefen Ausbuchtungen bilden. Letztere werden quer durch den Stamm hindurch durch Kambium verbunden, worauf mehrere Kambiumringe nebeneinander im Stengel liegen.
2. Epiphyten[107]. Eine andere Gruppe von Kormophyten kann die Blätter dadurch in stärkeres Licht bringen, daß ihre Vertreter nicht im Boden wurzeln, sondern sich von vornherein in den Kronen der höchsten Bäume auf ihren Ästen ansiedeln. Solche Pflanzen nennt man Epiphyten. Diese Bäume dienen ihnen nur als Unterlagen; sie können deshalb auch durch anorganische Substrate, z. B. Felsen, ersetzt werden. Zu epiphytischer Lebensweise sind natürlich nur solche Gewächse geeignet und befähigt, deren Samen durch Luftströmungen oder durch Tiere immer wieder auf die Äste der Bäume gebracht werden. Für die epiphytischen Pflanzen ist offenbar die Beschaffung des nötigen Wassers und der Nährsalze recht schwierig. Infolgedessen kommen sie nur in warmen Gebieten mit reichlichem Regenfall und großer Luftfeuchtigkeit, deshalb also vor allem in den tropischen Regenwäldern, vor. Außerdem findet man bei ihnen oft eigenartige Einrichtungen, die diesen Schwierigkeiten begegnen: bei vielen Epiphyten Sproßknollen als Wasserspeicher (z. B. Orchideen), die bei Regenwetter gefüllt werden, oder Einrichtungen, um Wasser aufzufangen.
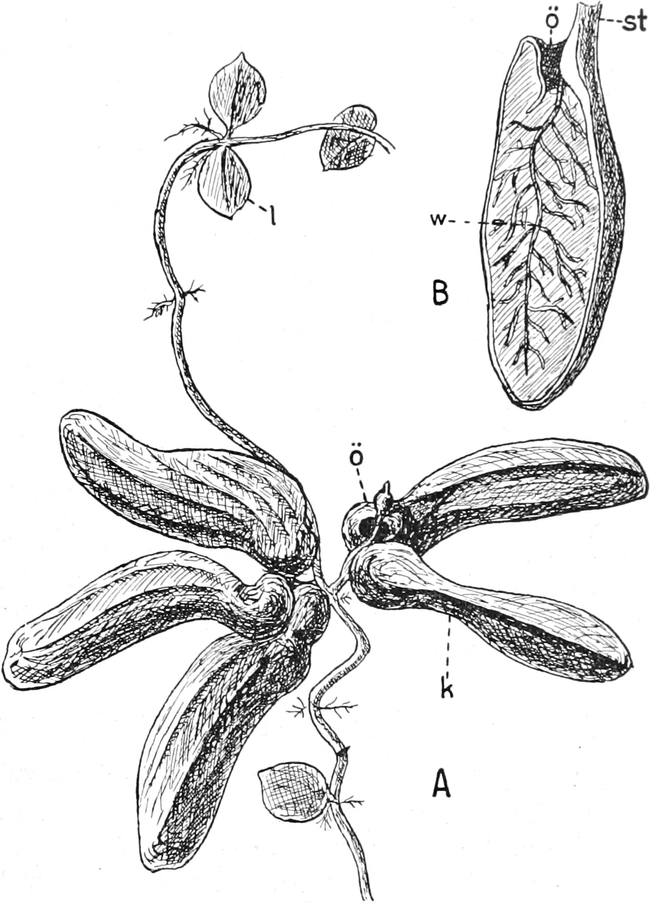
Fig. 211. Dischidia Rafflesiana mit Laub- (l) und Kannenblättern (k). B Längsschnitt einer Kanne. ö Öffnung, st Stiel der Kanne, w Wurzel. A ca. 1⁄3, B ca. 1⁄2 nat. Gr. Nach TREUB.