ERSTER TEIL Allgemeine Botanik. (continued 8)
Reading edition
Auch die Gewebe der Wasserformen zeigen manche Abweichungen von denen der Landformen: in den Stengeln fehlen die verdickten Zellen, und auch die Leitbündel sind reduziert; die Blätter erinnern an Schattenblätter. In schroffstem Gegensatz zu den Wasserpflanzen stehen solche Landpflanzen, die bei geringer Wasserzufuhr bzw. bei starker Transpiration entstanden sind; hier sind die Leitbündel sehr kräftig entwickelt, und in der Epidermis werden Einrichtungen ausgebildet, die wir unter den Mitteln zum Schutz vor zu großer Transpiration kennen gelernt haben.
Neben den eigentlichen Nährstoffen, die zum Aufbau der Pflanzensubstanz Verwendung finden, verdient auch der Sauerstoff genannt zu werden. Obwohl sein Eintritt in die Pflanze mit einer Verminderung der organischen Substanz verbunden ist, ist er — bzw. die durch ihn bewirkte Atmung — doch ganz unentbehrlich für das Wachstum. Bei den Aërobionten wenigstens steht das Wachstum nach Sauerstoffentziehung völlig still; auch eine Verminderung oder Vermehrung des normalen Sauerstoffgehaltes der Luft beeinflußt es schon.
Aber auch Reize mannigfacher Art gehen von Stoffen aus, die auf die Pflanze einwirken.
Da sind zunächst die Gifte zu nennen, Stoffe, die schon in sehr geringer Konzentration das Wachstum und schließlich überhaupt das Leben sistieren. So tötet Kupfervitriol Algen, zumal Spirogyren, aber auch Erbsen in Wasserkultur, schon in der Verdünnung 1 : 25000000. Auffallenderweise wirken aber viele Gifte in starker Verdünnung geradezu stimulierend auf das Wachstum und bewirken eine bessere Ausnützung der Nährstoffe. Chemische Reizung anderer Art spielt vor allen Dingen bei der Keimung vieler Samen, Sporen und Pollenkörner sowie bei der Entwicklung der Früchte eine große Rolle. Viele parasitische Pilze und auch parasitische Phanerogamen (Orobanche, Lathraea) werden durch noch unbekannte, von ihren Wirten ausgehende Stoffe zum Wachstum gereizt. Bei Algen und Pilzen kann namentlich durch hohe Konzentration gewisser Nährstoffe eine beträchtliche Gestaltsveränderung hervorgerufen werden.
6. Einflüsse fremder Organismen. Pilze und Bakterien, die parasitisch in einer Pflanze leben, veranlassen nicht selten weitgehende Deformationen in ihr, die man Gallen[214] nennt. In einfacheren Fällen entsteht dabei nur eine Vergrößerung der Zellen, in komplizierteren treten qualitative Veränderungen der Organe ein. Noch viel auffallender sind die Gallenbildungen, die durch Tiere, vor allem Insekten an den Pflanzen hervorgebracht werden. Es entstehen Wucherungen, die dem Parasiten zur Wohnung und Nahrung dienen und die in ihrem Bau oft als durchaus nützlich für den Parasiten erscheinen: wir treffen Schutzschichten, Nährschichten und Deckelbildungen, die für die Pflanze selbst ganz ohne Bedeutung sind.
Die von dem Rostpilz Aecidium Euphorbiae infizierte Zypressenwolfsmilch (Euphorbia Cyparissias) wird unfruchtbar, bleibt unverzweigt, erhält kürzere aber breitere Blätter und erscheint in ihrem ganzen Aussehen so verändert, daß man sie kaum wieder erkennt. Blattläuse können Vergrünungen der befallenen Blütensprosse veranlassen, wobei statt Blumenblättern laubblattähnliche Gebilde entstehen. Besonders eigenartig sind die Gallen (Cecidien), deren Bildung durch Pilze und vornehmlich durch Tiere (Würmer und Arthropoden) bedingt wird. Der Eingriff dieser Organismen in die normale Entwicklung der befallenen Pflanze ist mehr oder weniger bedeutend, je nachdem er die embryonale Substanz der Vegetationspunkte oder ein schon angelegtes, jedoch noch in Ausbildung begriffenes, oder endlich ein schon fertiges Glied des Pflanzenkörpers trifft. Es können histoide Gallen entstehen, bei welchen es sich um Produkte abnormer Gewebebildung handelt, oder organoide, die auf Umbildung oder Neubildung der Glieder des Pflanzenkörpers beruhen. Die letzteren sind besonders lehrreich. Die Larve der Gallmückenart Cecidomyia rosaria, die über dem Vegetationspunkt der befallenen Weidensprosse sich entwickelt, veranlaßt die Verbildung der ganzen Sprosse, die Entstehung jener Gallen, die als Weidenrosen bekannt sind und Blattschöpfe aus stark veränderten Blättern und gestauchten Achsenteilen darstellen. Verschiedene Fliegen (Diptera) legen ihre Eier in noch unfertige Blätter und regen um so stärkere Anschwellungen und Rollungen an, je jünger die Blätter im Augenblick der Infektion waren. Unverändert in seiner Gesamtausbildung bleibt hingegen das Blatt der Eiche, das erst im schon weit entwickelten Zustand von Gallwespen der Gattung Cynips angestochen wird; hier wird nur eine lokale Wucherung des Blattgewebes gebildet, die zur Bildung der kugeligen gelben oder roten, an den Seitenrippen der Blattunterseite sitzenden Gallen führt.
Auch „Symbionten“, d. h. friedlich zusammenlebende Organismen, von denen nicht der eine die Rolle des Wirtes, der andere die des Parasiten spielt, können sich formativ beeinflussen. Das sieht man z. B. bei den Flechten.
Es ist wahrscheinlich, daß bei der Beeinflussung durch fremde Organismen neben der Verwundung stoffliche Wirkungen die Hauptrolle spielen. Freilich konnte bisher nur in seltenen Fällen eine der Gallbildung ähnliche Deformation schon durch Einwirkung toter, aus dem Gallenbewohner extrahierter Substanzen erzielt werden. Auch Parasiten, die keine Gallbildung zur Folge haben, wirken durch ihre Gifte stofflich auf die Wirtpflanze ein. Umgekehrt kann die Wirtpflanze durch Bildung von Antikörpern den Parasiten schädigen oder ihn ganz am Eindringen hindern. So hat HEINRICHER gezeigt, daß manche Birnsorten leicht, andere schwer von der Mistel infiziert werden, und er hat wahrscheinlich gemacht, daß eine einmalige Infektion mit dem Schmarotzer den Wirt bei künftigen Infektionen widerstandsfähiger macht. Es kommen also auch im Pflanzenreich Immunitätserscheinungen vor, sie sind aber hier bei weitem nicht so eingehend untersucht wie bei Tieren[215].
7. Rückblick auf die äußeren Faktoren. Es hat sich gezeigt, daß eine Menge von äußeren Faktoren in einfacheren Fällen nur auf die Wachstumsgeschwindigkeit, in komplizierteren dagegen auch auf die schließliche Gestalt der Pflanze von Einfluß ist. Wir pflegen die Gestalt der Pflanze, die uns gewöhnlich in der Natur entgegentritt, als ihre normale Gestalt zu bezeichnen. Jede Abweichung von dieser, die unter dem Einfluß äußerer Faktoren entsteht, nennen wir eine Modifikation dieser normalen Gestalt. Es ist aber klar, daß auch die Normalform lediglich der Ausdruck ganz bestimmter Außenfaktoren ist, nämlich derjenigen, die gewöhnlich die Pflanzen während ihrer Entwicklung treffen. Mit anderen Worten, Normalform und Modifikation sind beide gleich gesetzmäßige Bildungen. Nicht die Modifikation, sondern nur die Konstellation von Außenbedingungen, unter denen sie entstanden ist, ist abnorm. Wenn auch manche dieser Veränderungen für die betroffene Pflanze ganz bedeutungslos sind oder gar, wie das bei den Gallen betont wurde, nur für den Veranlasser der Veränderung von Nutzen sind, so ist doch eine große Zahl von Reaktionen auf äußere Reize derart, daß die Pflanze einen Nutzen von ihnen hat. So haben wir z. B. die Überverlängerung beim Etiolement, die charakteristische Ausbildung der amphibischen Pflanzen im Wasser bzw. auf dem Lande, die Steigerung des Transpirationsschutzes bei Zunahme der Lufttrockenheit usw. usw. als nützliche Reaktionen, als Anpassungen zu bezeichnen, Woher es kommt, daß die Pflanze oft mit Anpassungen reagiert, ist an dieser Stelle nicht zu besprechen (S. 179). Im Gegensatz zu den Anpassungen nennen wir solche Modifikationen, die für die Pflanze nutzlos oder gar schädlich sind Mißbildungen.
B. Innere Faktoren.
Auf innere Faktoren müssen wir stets dann schließen, wenn eine Veränderung am Organismus bei Konstanz aller Außenfaktoren eintritt. Wir können die Innenfaktoren bei weitem nicht so gut analysieren wie die Außenfaktoren, und deshalb ist die Zurückführung mancher Erscheinungen auf „innere Ursachen“ oft nicht viel mehr als ein Geständnis unserer Unkenntnis.
1. Anlagen. Innere Ursachen sind zunächst einmal die „Anlagen“, die eine Pflanze von ihren Eltern mitbekommen hat; diese bewirken, daß aus der Spore eines Pilzes immer wieder dieser Pilz, aus dem Samen der Bohne wieder eine Bohne hervorgeht. Sie bewirken auch im einzelnen, daß eine bestimmte „Art“ bei gleichen Außenbedingungen in allen Individuen die gleichen Eigenschaften hat, wie z. B. Blütenfarbe, Blattgestalt, Größe usw. Den Bestand einer Spezies an Anlagen kann man im allgemeinen nicht experimentell verändern, ja man kann ihn nicht einmal ohne weiteres durch Beobachtung feststellen; erst das Vererbungsexperiment gibt über ihn Aufschluß. Deshalb kann auch erst bei Behandlung der Vererbung mehr von den „Anlagen“ gesagt werden (S. 280).
2. Korrelationserscheinungen[216]. Wenn auch äußere Faktoren einen weitgehenden Einfluß auf den inneren Bau der Pflanzen haben, so findet die Gewebedifferenzierung doch auch bei ganz konstanten äußeren Bedingungen statt — sie ist also durch innere Ursachen bewirkt. Was für Ursachen das im einzelnen sind, die eine embryonale Zelle in eine bestimmte Entwicklungsrichtung hineindrängen, das wissen wir nicht. Nur eins ist uns ganz sicher bekannt: aus jeder Zelle des Vegetationspunktes kann noch alles werden, alle Zellen sind ihren Anlagen nach gleich. Daß die eine sich so, die andere sich anders entwickelt, ist einzig und allein durch die Wechselbeziehungen oder Korrelationen bedingt, die zwischen den Zellen bestehen. Heben wir diese Beziehungen auf, heben wir den Zusammenhang zwischen den Zellen auf, so sehen wir bei den Erscheinungen der Restitution (S. 245) in der Tat ganz andere Leistungen von den Zellen vollführt, als sie im Zusammenhang zuvor zeigten. Und nicht nur embryonale Zellen, auch ausgewachsene können noch nach Aufhebung des Zusammenhangs mit den Nachbarzellen neue Leistungen übernehmen und dann auch neue Gestalten ausbilden. So können bei Restitutionsprozessen Zellen, die ausgewachsen waren und die bald abgestorben wären, wieder jung werden, und wir sehen z. B. aus einer Epidermiszelle (Fig. 256) die ganze Fülle von Zellarten sich bilden, die für die betreffende Pflanze charakteristisch sind. Es ist klar, daß ein Organismus, bei dem solche gegenseitige Beeinflussung der Zellen fehlt, nicht die Arbeitsteilung aufweisen kann, wie wir sie bei den höheren Pflanzen zu sehen gewohnt sind. Es sind also, mit anderen Worten, die Korrelationen mit zu den „Regulationen“ zu rechnen, ohne die ein Organismus undenkbar ist.
Nicht nur zwischen den Zellen, auch zwischen den äußeren Organen der Pflanze bestehen solche Korrelationen. Nimmt man diese auch für gewöhnlich nicht wahr, so treten sie doch sofort zutage, wenn man entweder ein Organ entfernt und nun die Reaktion des isolierten Organs sowie der Pflanze, von der es genommen ist, studiert, oder wenn man ein Organ künstlich an einen Platz bringt, an dem es vorher nicht war.
Im ersten Fall können zunächst einmal sog. Kompensationen auftreten: Durch Entfernung eines Organs werden andere größer. Die Blätter, die am Vegetationspunkt entstehen, verhindern ältere Blätter, ihre maximale Größe zu erreichen; wird der Vegetationspunkt entfernt, so nimmt demnach (z. B. beim Tabak) die Blattgröße zu. Das Austreiben einzelner Achselknospen verhindert zahlreiche andere am Streckungswachstum; werden aber die dominierenden Sprosse entfernt, so treiben die bisher ruhenden Knospen sofort aus. Man wird daraus schließen, daß auch in der normalen Entwicklung die Größe der Organe durch korrelative Einflüsse der Nachbarorgane mit bestimmt wird. In anderen Fällen sehen wir einen mehr qualitativen Erfolg der Entfernung eines Organs. Wird der Gipfel einer Tanne entfernt, so tritt einer der nächststehenden Seitenzweige an seine Stelle: er nimmt den aufrechten Wuchs des Hauptsprosses an und ordnet auch seine Nadeln so an, wie der Hauptsproß das tut. Wir dürfen also vermuten, daß für gewöhnlich die schräge Lage und die dorsiventrale Anordnung der Benadelung am Seitenzweig sich unter dem Einfluß des Hauptsprosses vollzieht. In diesen und in zahllosen anderen Fällen korrelativer Beeinflussung ist es übrigens keineswegs notwendig, ein Organ zu entfernen; meist genügt es, wenn es z. B. durch Eingipsung oder durch andere Mittel in seiner normalen Funktion gestört wird.
Daß an isolierten Organen je nach Umständen neue Wurzeln, neue Sprosse entwickelt werden, ist bei der Besprechung der Restitution S. 246 ausgeführt worden. So wie jede Zelle ursprünglich zu vielfacher Gestaltung befähigt ist, so sind es auch die Glieder. Nur die gegenseitige Beeinflussung hindert sie an so vielseitiger Betätigung.
Korrelationen können endlich noch dadurch nachgewiesen werden, daß man ein Organ an eine neue Stelle verpflanzt. Mit den Methoden der Transplantation, die aus der Praxis der Gärtnerei hervorgegangen sind, gelingt es bei manchen Pflanzen leicht, einen abgetrennten Teil an eine Wunde anwachsen zu lassen. Man nennt den zugefügten das „Pfropfreis“, den anderen Komponenten die „Unterlage“. Das Reis kann der gleichen Spezies entstammen wie die Unterlage oder von einer verwandten Pflanze entnommen sein. Bei solchen Transplantationen können auch korrelative Beeinflussungen auftreten. Eine solche ist z. B. schon darin gegeben, daß durch die Verwachsung die Restitution sowohl an der Unterlage wie am Reis unterbleibt. Es adoptiert gewissermaßen der eine Teil die Wurzeln des anderen, der andere die Sprosse des ersten, und damit entfällt die Notwendigkeit, solche Organe neu zu bilden.
Die künstliche Verwachsung spielt ähnlich wie die künstliche Vermehrung eine große Rolle in der Gärtnerei, bei der Veredelung. Es werden abgetrennte knospentragende Teile einer Pflanze, das sog. Edelreis, auf einer bewurzelten Pflanze, der sog. Unterlage, zur Verwachsung gebracht, weil es so rascher als durch künstliche Vermehrung oder gar durch Samen gelingt, hochwüchsige Exemplare einer Rasse oder Art herzustellen.
In der gärtnerischen Praxis haben sich verschiedene Methoden für die Verbindung der Pflanzenteile bei der Veredelung herausgebildet, von denen hier nur die wichtigsten erwähnt sein mögen. Unter Pfropfen versteht man solche Transplantationen, bei denen mit Knospen besetzte Zweige mit dem abgestutzten Stamm der Unterlage zur Verwachsung gebracht werden. Es wird dabei beachtet, daß wenigstens stellenweise die Kambialregionen der zu verbindenden Teile aufeinander stoßen. Man pfropft im übrigen entweder in den Spalt, in die Rinde oder in die Seite. Im ersten Falle wird das Ende der Unterlage längs gespalten, und in den Spalt wird entweder ein einziges Pfropfreis eingesetzt, das dann so stark sein kann wie die Unterlage, oder es wird auf jeder Seite peripherisch ein Reis zur Verwachsung gebracht; unter allen Umständen wird die Basis des Pfropfreises keilförmig zugespitzt. Bei dem Pfropfen in die Rinde wird das flach zugeschnittene Edelreis zwischen die durch einen Längsspalt klaffend gemachte Rinde und den Splint eingeschoben (Fig. 265 I). Bei dem Pfropfen in die Seite werden die Edelreiser, keilartig zugeschnitten, in seitliche Einkerbungen der Unterlage eingesetzt. — Wird die Unterlage schräg abgeschnitten und über ihr ein ebenfalls schräg zugeschnittenes Pfropfreis von gleicher Dicke so angesetzt, wie das Fig. 265 II zeigt, so spricht man wohl von Kopulieren. — Eine besondere Art der Transplantation ist das Okulieren (Fig. 165 III), wobei nicht ein Zweigstück, sondern eine Knospe, ein „Auge“, unter die Rinde der Unterlage eingeschoben wird. Das Edelauge bleibt im Zusammenhang mit einem schildförmigen Rindenstück, das sich leicht vom Splint ablöst, wenn die Pflanzen „im Saft“ sind. Durch einen T-förmigen Schnitt wird dann die Rinde der Unterlage gelockert, das Rindenschild des Edelauges eingeschoben und das Ganze dicht abgeschlossen. Auf das „treibende Auge“ okuliert man im Frühjahr, auf das „schlafende“, erst im nächsten Jahr austreibende Auge, im Sommer.
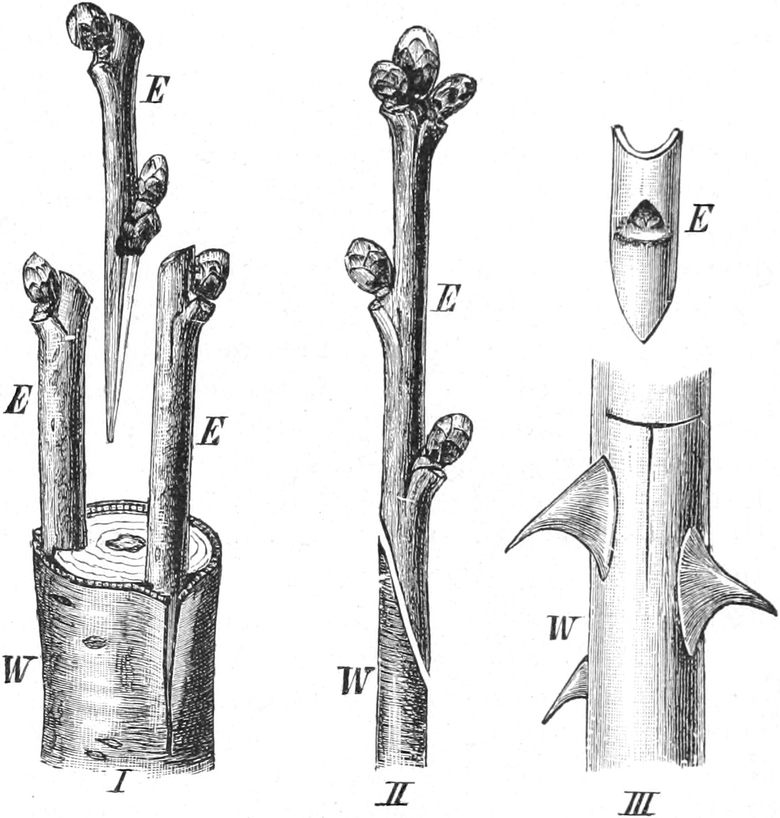
Fig. 265. Verschiedene Veredelungsweisen. I Pfropfen. II Kopulieren. III Okulieren. In allen Figuren bedeutet W Unterlage (Wildling) E Edelreis bzw. Edelauge. Nach NOLL.
Die Verwachsung erfolgt mit Hilfe eines an beiden Pflanzenteilen entstehenden Wundgewebes, des sog. Kallus (vgl. S. 140). In dem Kallus bilden sich nachträglich Gefäße und Siebröhren aus und verbinden die gleichartig funktionierenden Elemente beider Stücke. — Derartige Verwachsungen sind aber nur bei nahe verwandten Pflanzen möglich. So lassen sich die zu den Amygdalaceen gehörigen Obstbäume leicht verbinden, also Pfirsich, Aprikose, Mirabelle, Pflaume und Schlehe untereinander, ebenso die Pomaceen Birne und Quitte, Quitte und Weißdorn, nicht aber Apfel mit Pflaume oder gar, wie auch behauptet worden ist, mit Eiche u. dgl.
Die Polarität, die sich bei der Restitution so bemerkbar macht, tritt auch bei künstlich herbeigeführter Verwachsung sehr auffallend zutage. Ungleichnamige Pole einer Pflanze sind leicht zum Verwachsen zu bringen, gleichnamige verwachsen nicht oder schwieriger, und ihre Verbindung trägt dann dauernd einen schadhaften Charakter.
Unterlage und Pfropfreis beeinflussen sich in mannigfacher Weise. So gewinnen z. B. Teile einjähriger Pflanzen, wenn sie auf ausdauernde gepfropft werden, eine längere Lebensdauer. Ebenso läßt sich auch der entgegengesetzte Erfolg, Verkürzung der Lebensdauer durch Pfropfung, erzielen. Aber auch qualitative Erfolge können eintreten, die im Extrem so weit gehen, daß eine Laubknospe durch Aufpfropfung auf eine passende Unterlage zu einem Blütensproß umgewandelt werden kann. Die spezifischen Eigenschaften der beiden Komponenten bleiben indes bei der Transplantation erhalten; gewisse als „Chimären“ bezeichnete Fälle scheinen dem auf den ersten Blick zu widersprechen, doch zeigt sich bei näherer Betrachtung, daß auch bei ihnen, obwohl sie äußerlich als Mittelbildungen zwischen den beiden Pfropfsymbionten erscheinen, dennoch keine „Vermischung“ zweier Spezies vorliegt.
Chimären[217]. In unseren Gärten finden sich unter dem Namen Laburnum Adami und Crataegomespilus einige Pflanzen, die in mehrfacher Hinsicht an Bastarde (S. 278) erinnern, die aber zweifellos nicht durch sexuelle Vereinigung der Mutterpflanzen entstanden sind. Laburnum Adami (Fig. 266) ist eine Mittelbildung zwischen Laburnum vulgare und Cytisus purpureus und bildet sehr häufig Zweige aus, die man als „Rückschläge“ zu Laburnum vulgare betrachten muß, seltener solche, die ganz wie Cytisus purpureus aussehen. Als Crataegomespilus oder Bronveauxhybriden werden einige Mittelformen zwischen Crataegus monogyna und Mespilus germanica bezeichnet, die ebenfalls sehr häufig Rückschläge zu den Stammformen bilden. Von den Bronveauxhybriden ist nun der Ursprung bekannt. Man weiß, daß die Mittelformen — es existieren deren mehrere differente — in der Nähe einer Pfropfstelle von Mespilus auf Crataegus zuerst in einem Garten in Bronveaux bei Metz entstanden sind. Daß Laburnum Adami ähnlichen Ursprungs ist, muß jetzt als sicher gelten. Man hat demnach die beiden Pflanzen als „Pfropfhybriden“ betrachtet, d. h. als Bastarde die nicht durch Verschmelzung von Sexualzellen, sondern durch eine irgendwie beschaffene Beeinflussung vegetativer Zellen hervorgebracht worden sind.
HANS WINKLER hat solche „Pfropfbastarde“ experimentell hergestellt. Er pfropfte Solanum nigrum (Nachtschatten) auf Solanum Lycopersicum (Tomate) und schnitt nach erfolgter Verwachsung den Stengel des Pfropfreises quer durch die Pfropfstelle ab. Unter den Adventivsprossen, die sich unmittelbar aus der Verwachsungsstelle der beiden Komponenten bildeten, befanden sich auch ausgesprochene Mittelbildungen zwischen Tomate und Nachtschatten. Und zwar traten zunächst solche Formen auf, die aus verwachsenen Längshälften der beiden aufeinander gepfropften Pflanzen bestanden; WINKLER nannte sie Chimären. Später aber stellten sich auch andere, äußerlich einheitlich erscheinende Mittelbildungen ein (Fig. 267), die zunächst als die gesuchten Pfropfbastarde gedeutet wurden. Nähere Untersuchung zeigte aber, daß auch sie als Chimären zu betrachten sind, da sie aus verwachsenen, sonst aber unveränderten Teilen der Tomate und des Nachtschattens bestehen. Es sind aber nicht Längshälften, die miteinander verwachsen sind, sondern Innen- und Außenschichten derart, daß die Schichten des Vegetationspunktes (vgl. S. 75 u. 269) aus Geweben verschiedener Spezies aufgebaut sind. Man nennt sie „Periklinalchimären“ (Mantelchimären); im Gegensatz dazu heißen die der Länge nach verwachsenen Chimären „Sektorialchimären“.
Auch Cytisus Adami und die Crataegomespili sind Periklinalchimären; echte Pfropfbastarde, bei denen durch Pfropfung eine Vermischung der Arteigenschaften in der einzelnen Zelle erfolgt wäre, sind bisher noch nicht bekannt.
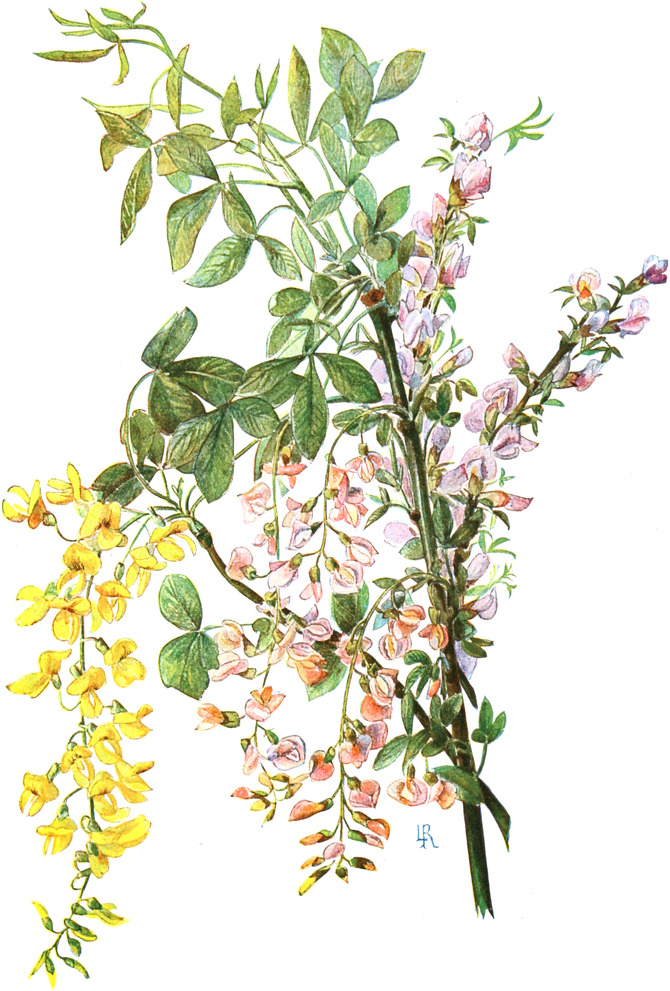
Fig. 266. Laburnum Adami Poit. (Cytisus Adami Hort.) mit Rückschlagszweigen in seine beiden Stammformen: Laburnum vulgare (links) und Cytisus purpureus (rechts). Nach NOLL.
⇒ GRÖSSERES BILD
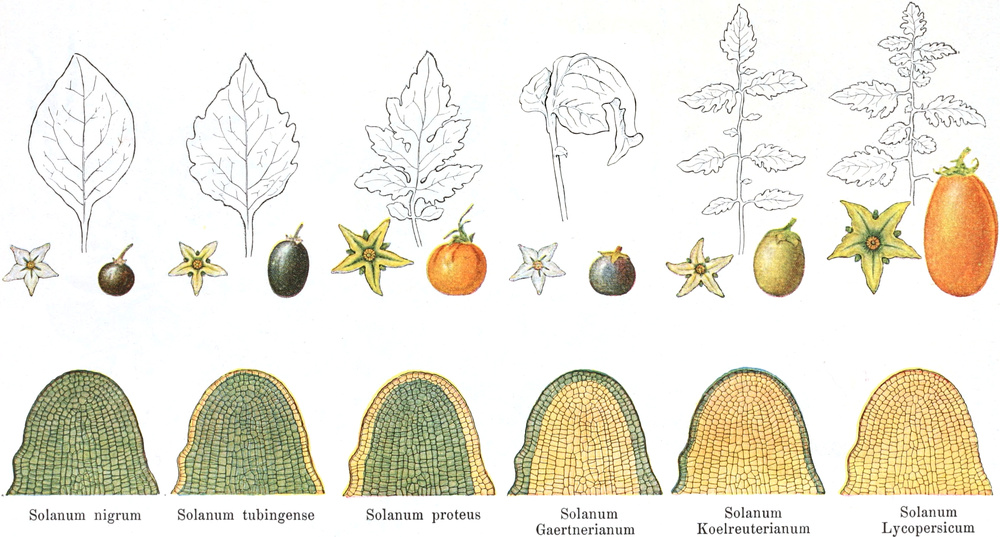
Fig. 267. Pfropfchimären zwischen Solanum nigrum und Solanum Lycopersicum. Nebst den Eltern. Original von H. WINKLER. Dargestellt ist jeweils ein Blatt, eine Blüte und eine Frucht sowie ein Schema des Vegetationspunktes. In letzterem sind die von Solanum nigrum stammenden Schichten grün, die von der Tomate herrührenden gelb gehalten.
⇒ GRÖSSERES BILD
Solanum tubingense hat das Dermatogen der Tomate, das Innere des Nachtschattens; bei Solanum Kölreuterianum ist es gerade umgekehrt; bei S. proteus sind die zwei äußeren Lagen von der Tomate, die übrigen vom Nachtschatten, und bei S. Gaertnerianum ist es wahrscheinlich umgekehrt (Fig. 267). Entsprechend stammt bei Cytisus Adami das Dermatogen von Cytisus purpureus, das Innere von Laburnum vulgare. Bei einer der Bronveauxhybriden, der forma „Asnieresii“, ist ein Crataeguskern von einer Mispelepidermis bedeckt, die andere Form „Dardari“ hat zwei oder mehr Mantelschichten von Mespilus. Diese Angaben beziehen sich auf den Bau des Vegetationspunktes und der aus diesem entstehenden Achsen. Die Blätter dagegen können nur bei Formen mit einschichtigem Mantel Chimären sein; wo aber der Mantelsymbiont zweischichtig auftritt, da muß er nach NOACK[218] das ganze Blatt aufbauen, da dieses nur aus Epidermis und Hypodermis des Vegetationspunktes sich herleitet. Demnach können diese Blätter keine Periklinalchimären sein; auffallenderweise zeigen sie aber doch Zwischenbildungen zwischen den Komponenten.
Wenn es gelingt, aus der einzelnen Schicht Adventivsprosse zu erzielen, so haben diese den reinen Speziescharakter dieser Schicht ohne jede Spur eines Einflusses des anderen Symbionten. — Über die Entstehung der Periklinalchimären wissen wir noch nichts sicheres, doch ist kaum daran zu zweifeln, daß die Vegetationspunkte der Adventivsprosse aus Zellen der beiden Komponenten sich aufbauen, und zwar derart, daß die eine Spezies die Bildung des Kernes, die andere die des Mantels übernimmt.
III. Der Entwicklungsgang und seine Abhängigkeit von äußeren und inneren Faktoren.
Der Entwicklungsgang besteht in einer Folge von Vorgängen, die sich bei einer bestimmten Spezies immer wieder in der gleichen Weise zu wiederholen pflegt. Doch lehren schon gelegentliche Beobachtungen in der Natur, erst recht aber Versuche, daß diese Folge veränderungsfähig sein muß. Die Aufgabe der Entwicklungsphysiologie ist es, den Entwicklungsgang experimentell zu beherrschen und so Einblick in seine Ursachen zu gewinnen. Von großer Wichtigkeit ist es auch, die Teilprozesse der Entwicklung voneinander zu unterscheiden und durch ihre ungleiche Abhängigkeit von Außenfaktoren voneinander zu trennen.
Wenn wir auch sehr viele Einzelheiten eines Entwicklungsganges heute noch nicht experimentell beherrschen, so drängen uns doch die bisherigen Erfolge die Überzeugung auf, daß der typische Entwicklungsgang nur eine von vielen Möglichkeiten ist, die stets dann eintritt, wenn ein bestimmter Komplex von Ursachen gegeben ist, und daß jede Abweichung von diesem Ursachenkomplex auch in der Entwicklung der Pflanze ihren Ausdruck findet.
Alle Umgestaltungen aber fallen um so extremer aus, je jünger die Zellen sind, die beeinflußt werden. Wird bereits die embryonale Substanz eines Vegetationspunktes von ihrem normalen Entwicklungsgang abgelenkt, so kann ein ganz anderes Gebilde an Stelle des erwarteten treten. Oder es bilden sich Mittelformen von mehr oder weniger monströser Gestalt aus. Die embryonale Substanz der Vegetationspunkte ist noch zur Bildung aller Anlagen befähigt, die den Formenkreis der Spezies umfassen, und so kann z. B. an Stelle einer Blüte ein vegetativer Sproß entstehen, ja in seltenen Fällen kann sogar der Vegetationspunkt einer Wurzel sich unmittelbar als Sproß weiter entwickeln. Hingegen werden schon angelegte Blätter in ihrer Veränderung sich vornehmlich innerhalb des Formenkreises der Blattmetamorphose halten, Blumenblätter beispielsweise an Stelle von Staubblättern oder Fruchtblättern sich bilden. Je später der ändernde Einfluß auf die Anlage sich geltend macht, um so unvollkommener wird ihre Umwandlung sein.
Die Entwicklung der Organismen vollzieht sich nicht in ewig gleicher Tätigkeit, in andauernd gleichem Wachstum. Vielmehr sehen wir überall, meist periodisch, Veränderungen auftreten. So wechseln Perioden der Ruhe mit solchen der Wachstumstätigkeit; und während der letzteren sehen wir periodisch Zellteilungen auftreten, periodisch andere Blattformen und Sproßformen entstehen und Fortpflanzungsorgane sich bilden, periodisch auch kleinere und größere Teile absterben, bis schließlich der Tod des ganzen Organismus erfolgt.
A. Ruhe und Wachstumsbeginn[219].
Es ist schon früher ausgeführt worden, daß wir drei verschiedene Zustände in der Pflanze unterscheiden: den des aktiven Lebens, den des latenten Lebens und den des Todes. Es wurde auch erwähnt, daß im latenten Leben alle Lebensäußerungen stillstehen: alle Stoffwechseltätigkeit, selbst die Atmung, ist sistiert, und von Wachstum und Bewegung ist nichts zu bemerken. Im Gegensatz zum toten Zustand aber bleibt bei latentem Leben die Entwicklungsfähigkeit gewahrt.
Ruhezustände. Solches latentes Leben treffen wir bei den Samen, bei manchen Sporen der niederen Pflanzen, aber auch bei vielen ausgewachsenen Teilen und Knospen in ungünstiger Jahreszeit (Kälteperioden, Trockenperioden). Es wird aber nicht unbegrenzt von der Pflanze ertragen, selbst Samen und Sporen, die es am vollkommensten zeigen, büßen früher oder später die Entwicklungsfähigkeit ein, sie sterben. — In anderen Fällen sehen wir nicht alle Lebensfähigkeit unterdrückt, sondern einzig und allein das Wachstum sistiert. So z. B. bei unbefruchteten Eizellen.
Auf den ersten Blick möchte man glauben, daß die Ruhezustände während der ungünstigen Jahreszeit unmittelbar von dieser veranlaßt werden. Tatsächlich tritt aber auch bei vielen tropischen Bäumen periodisch ein Wachstumsstillstand ein; bei andauernd günstiger Temperatur und Wasserzufuhr sehen wir die Blattbildung nicht kontinuierlich vor sich gehen, sondern von Ruhepausen unterbrochen, so daß im Laufe eines Jahres mehrfaches Austreiben erfolgt. Und bei den einheimischen Pflanzen ist der Eintritt der Ruheperiode keineswegs durch die zu niedere Temperatur bedingt. Viele Bäume hören schon im Mai oder Juni mit der Blattentfaltung völlig auf. Auch zeigen unsere Bäume, in ein tropisches Klima versetzt, vielfach eine ähnliche Periodizität wie dort einheimische Pflanzen. Diese Erscheinungen werden noch nicht von allen Forschern gleichartig gedeutet. Auf der einen Seite wird angenommen, daß jede Periodizität im Wachsen der Pflanze durch eine Periodizität in der Außenwelt bedingt sei, die freilich nicht nur in der Zufuhr von Wärme und Wasser, sondern auch z. B. in der Aufnahme von Nährsalzen gegeben sein kann. Auf der anderen Seite nimmt man eine Periodizität aus inneren Ursachen an, die sich in Ländern mit wechselnden Jahreszeiten diesen anpaßt: die Bäume verlegen bei uns die Ruhezeit in den Winter, in anderen Ländern in die trockene Jahreszeit. Das ist durchaus nicht bei allen Pflanzen so. Es gibt bei uns einige Kräuter, wie z. B. Senecio vulgaris, die das ganze Jahr hindurch wachsen, wenn nur die äußeren Bedingungen es zulassen, und in den Tropen fehlt es erst recht nicht an dauernd wachsenden Pflanzen.
Eichen-, Buchen-, Apfel- und Birnbäume behalten in dem subtropischen Klima von Madeira ihre Ruheperiode bei; unter den noch gleichmäßiger günstigen Verhältnissen gewisser Tropengegenden, wie in den Bergen Javas, besteht eine Ruheperiode fort, aber sie verschiebt sich bei verschiedenen Individuen, ja sogar an den Ästen eines und desselben Baumes zeitlich derart, daß Eichen, Magnolien, Obst- und Mandelbäume wie gewisse dort einheimische Bäume zu gleicher Zeit belaubte und blattlose Zweige tragen.
Entwicklungsbeginn. Der Schluß des Ruhezustandes, der Wiederbeginn des Wachstums, ist vielfach lediglich mit der Herstellung der allgemeinen Wachstumsbedingungen gegeben. In anderen Fällen aber ist der Ruhezustand ein sehr fester. Die Herstellung der üblichen Wachstumsbedingungen genügt dann nicht, um ihn zu überwinden, doch läßt er sich manchmal durch besondere Reizmittel abkürzen.
Die Keimung der Samen erfolgt in der Regel nach Herstellung der allgemeinen Wachstumsbedingungen, vor allem also der nötigen Temperatur, Zufuhr von Sauerstoff und Wasser; doch fehlt es nicht an Beispielen, die spezielle Reize erfordern. Solche spezielle Reize heben auch die Entwicklungshemmung der Eizellen auf; für gewöhnlich werden sie mit der Befruchtung gegeben; doch können manche Eizellen auch ohne Befruchtung, z. B. durch Einwirkung von Chemikalien, zur Entwicklung angeregt werden (vgl. auch S. 277 Parthenogenesis).
Manche Samen machen eine längere Ruheperiode durch, ehe sie zu keimen beginnen. Zum Teil liegt das daran, daß sie erst nach der Loslösung von der Mutterpflanze voll ausreifen [„Nachreife“[220]], zum Teil aber auch daran, daß sie nur langsam Wasser aufnehmen. Vor allem fallen bei der Keimung große individuelle Differenzen auf. Es können einzelne Samen einer Pflanze oft jahrelang unverändert im Boden liegen, während gleichalte längst gekeimt haben; das hängt gewöhnlich mit der sog. Hartschaligkeit zusammen, d. h. mit einer außerordentlich erschwerten Quellungsfähigkeit der Schale. Diese scheint auch einen Grund dafür abzugeben, daß die Samen vieler Wasserpflanzen[221] in reinem Wasser nicht keimen können, während nach Zusatz von Säuren und Alkalien die Keimung beginnt. In einzelnen Fällen aber können auch völlig in Wasser gequollene Samen nicht keimen, solange ihnen nicht gewisse Stoffe oder Licht[222] geboten werden. Bei den sog. „Lichtkeimern“ sind meistens die roten oder gelben Strahlen wirksamer als die stark brechbaren, und es genügt oft eine erstaunlich kurze Belichtungszeit (Lythrum Salicaria 1⁄10 Sekunde bei 370 Hefner-Kerzen). Nicht selten vermögen eine gewisse hohe Temperatur oder chemische Einflüsse das Licht zu ersetzen. Chemische Reize spielen die Hauptrolle bei gewissen Parasiten (Orobanche, Tozzia), die nur in der Nähe ihrer Nährpflanzen keimen. — Als Gegenstück zu den Lichtkeimern mögen noch die Dunkelkeimer genannt sein (z. B. Amarantus), bei denen gerade das Licht die Keimung hindert oder verzögert.
Auch bei Sporen kann die Keimung entweder durch besondere Reize oder schon durch Herstellung der formalen Wachstumsbedingungen eingeleitet werden.
Ein auffallender und recht fester Ruhezustand findet sich bei unseren Laubbäumen. In einer bestimmten Jahreszeit, im Herbst oder früher, können ihre Knospen in keiner Weise zum Treiben gebracht werden (Stadium der Vollruhe). Späterhin aber (Nachruhe) bewirken nicht nur höhere Temperatur, sondern auch zahllose Reize (Frost, Wärme, Trockenheit, Dunkelheit, Beleuchtung, Ätherdämpfe, Azetylen, Tabakrauch, Verwundung, Wasserinjektion usw.) eine beträchtliche Verkürzung der Ruheperiode[223]; fast ebensogut kann aber auch kurz nach eingetretener Wachstumshemmung, in der Vorruhe, getrieben werden. Mit diesen Verhältnissen muß die gärtnerische Frühtreiberei rechnen.
Restitutionsreiz[224]. Wie bei den besprochenen Fällen von Wachstumsbeginn, so kann man auch bei den Restitutionen nach den Ursachen ihres Beginnens fragen. Und hier scheint die Antwort sehr einfach zu sein; sehen wir doch diese Erscheinungen in der Regel nach Verwundungen eintreten. Schon der Umstand, daß manchmal im Laufe der normalen Entwicklung Prozesse auftreten, die auffallend an Restitutionen erinnern, muß uns aber vorsichtig machen. So können z. B. in den Blattkerben von Bryophyllum junge Pflänzchen sich entwickeln, und bei gewissen Begonien entstehen nicht nur am abgeschnittenen Blatt, sondern auch auf der intakten Lamina Sproßbildungen. Durch Experimente ist denn auch für viele echte Restitutionen festgestellt worden, daß nicht die Entfernung eines Organs, sondern vielmehr die Störung seiner normalen Funktion ihre Bildung auslöst (S. 260).
Polarität. Die befruchtete Eizelle der Blütenpflanzen bildet, sowie ihre Wachstumshemmung aufgehoben ist, sofort zwei verschiedene Vegetationspunkte, einen, der den Sproß, einen anderen, der die Wurzel erzeugt. Entsprechende polare Differenzierungen, Ausgestaltung von Basis und Spitze finden sich auch bei viel einfacher gebauten Pflanzen. Wenn auch schon gezeigt worden ist, daß in manchen Fällen ein äußerer Faktor bestimmt, welcher Teil der jungen Pflanze Basis und welcher Spitze wird, so ist doch bei allen höheren Pflanzen das polare Wachstum eine durchaus spezifische, auf inneren Ursachen beruhende Erscheinung: so wenig wir eine apolare kuglige Alge zu polarem Wachstum veranlassen können, so wenig gelingt es, eine polar gebaute höhere Pflanze apolar wachsen zu lassen.
Die in der Eizelle entstandene Polarität bleibt auch im großen und ganzen dauernd erhalten. Bei einzelnen Pflanzen aber sehen wir aus inneren Gründen eine Veränderung eintreten. So bilden sich bei Platycerium- und Adiantum-Arten unter den Farnen, Neottia nidus avis unter den Orchideen Sprosse direkt aus dem Wurzelvegetationspunkt. Bei den Natterzungen (Ophioglossum), deren vegetative Vermehrung ganz auf der Bildung von Wurzelsprossen beruht, rücken die Sproßanlagen fast bis auf die Wurzelspitze. Auch der Scheitel mancher Farnblätter (Adiantum Edgeworthii) vermag unmittelbar in der Bildung einer Sproßanlage aufzugeben.
Symmetrie. Jeder Vegetationspunkt baut dann in der für ihn charakteristischen Weise das betreffende Organ weiter und sorgt zugleich für Anlage von Seitenorganen, die in einer ganz bestimmten Verteilung (radiär, bilateral, dorsiventral) auftreten. So sehen wir also eine gewisse Symmetrie schon am Vegetationspunkt gegeben, und diese kann wenigstens in vielen Fällen durch rein innere Ursachen bestimmt werden; in anderen Fällen haben äußere Faktoren einen maßgebenden Einfluß.
B. Wachstum und Zellteilung.
Auch das in Gang gesetzte Wachstum verläuft nicht immer gleichmäßig. Wohl sehen wir manche Algenzellen, wie Vaucheria, oder Pilze, wie Saprolegnia, eine gegebene Zelle durch Spitzenwachstum immer weiter verlängern. In der großen Mehrzahl der Fälle aber ist dieser Verlängerung ein Ziel gesetzt, indem nach Überschreitung einer gewissen Größe durch Teilung das Normalmaß der Zelle wieder hergestellt wird. Dieses ist freilich kein konstantes. Es hängt nicht nur von äußeren, sondern maßgebend auch von inneren Umständen ab. So sehen wir z. B. meistens unmittelbar am Vegetationspunkt die Teilungen rasch eintreten, während sie später bei andauerndem Wachstum seltener werden. Dementsprechend nimmt die Zellgröße vom Vegetationspunkt bis in die Zone der Dauergewebe im allgemeinen recht beträchtlich zu. Von großer Bedeutung für die Zellgröße ist auch die Kernmasse, die sie enthält. Es ist in einigen Fällen durch gewisse Eingriffe gelungen, das Doppelte oder gar Vierfache der normalen Kernmasse in einer Zelle anzusammeln, und es zeigte sich, daß vielfach alle Derivate solcher Zellen beträchtlich größer waren als die Norm[154].
Immerhin kann man aber ein mittleres Maß der Zelle als eine erbliche Eigentümlichkeit jeder Pflanzenspezies betrachten. Und wenn man verschieden große Arten vergleicht, so fällt es auf, daß die Zellgröße nicht so variiert wie die Außendimensionen; mit anderen Worten: große Pflanzen sind in erster Linie (nicht ausschließlich) durch eine große Zahl von Zellen bedingt[225].
Was im einzelnen die Ursachen der Teilung sind, ist noch wenig bekannt[226]. Zweifellos handelt es sich um eine recht komplizierte Folge von Erscheinungen; sehen wir doch, daß häufig nicht nur das Protoplasma, sondern auch der Zellkern bei diesem Prozeß eine Rolle spielt, insofern als er die Teilung einleitet.
Zweifellos spielen zunächst äußere Faktoren eine große Rolle. So haben wir schon gesehen, daß die Intensität und Qualität des Lichtes z. B. bei Farnprothallien einen maßgebenden Einfluß auf die Zellteilung ausübt (S. 252). Daneben wirken auch innere Faktoren, vor allem das Alter der Zelle mit: während die junge Zelle teilungsfähig ist, nimmt diese Fähigkeit mit dem Alter mehr und mehr ab — doch können Außeneinflüsse von neuem die Teilung ermöglichen; das sieht man vor allem bei den Restitutionen. Wie HABERLANDT[227] gezeigt hat, sind es die aus verwundeten oder auch nur mechanisch etwas geschädigten Zellen stammenden Stoffe, die von neuem zur Teilung anregen. Auch bei der Plasmolyse entstehen solche Stoffe, vielleicht durch Zerreißung von Plasmafäden, und auch körperfremde Gifte können im gleichen Sinne wirken. — In den Sproßvegetationspunkten der höheren Pflanzen und auch bei manchen Algen ist eine gewisse Periodizität der Zellteilung[228] nachgewiesen, sie tritt z. B. bei Spirogyra des Nachts ein, offenbar weil sie vom Licht gehemmt wird. Bei Wurzeln aber finden wir zu allen Tageszeiten Kernteilungen, doch nicht gleich viele. Ein Maximum liegt in den Vormittagsstunden. Hier müssen noch unbekannte Außenfaktoren oder innere Ursachen bei dieser Periodizität mitwirken.
Nicht nur die Tatsache, daß eine neue Zellwand auftritt, auch die Richtung, in der sie entsteht, ist ein Problem der Entwicklungsphysiologie. Man hat schon lange bemerkt, daß die Stellung der neuen Scheidewände auffallende Ähnlichkeit mit dem Verhalten dünner gewichtsloser Flüssigkeitslamellen (z. B. Seifenlamellen) zeigt. Diese haben die Tendenz, sich auf die kleinste mögliche Fläche zusammenzuziehen, und setzen sich deshalb im allgemeinen möglichst unter rechtem Winkel an etwa vorhandene Wände an. Trotz der großen Ähnlichkeit in der Anordnung von Zellwänden einerseits und Flächen „minimae areae“ andererseits darf man doch nicht behaupten, die junge Zellwand werde aus den gleichen Ursachen wie jene in die beobachteten Lagen gebracht; denn die Zellwand ist nie flüssig.
Sehr auffällig ist das Prinzip der rechtwinkligen Schneidung im Vegetationspunkt der Phanerogamen gewahrt. Hier treten uns, wenn wir das von SACHS herrührende Schema eines Längsschnittes betrachten (Fig. 268), die Zellwände in zwei Systemen von Parabeln entgegen, die sich rechtwinklig durchschneiden und einen gemeinsamen Brennpunkt besitzen. Das erste System (I–VI in Fig. 268) verläuft mehr oder weniger parallel mit der Oberfläche des Vegetationspunktes; wir nennen diese Zellwände Periklinen. Die senkrecht zu ihnen stehenden Wände (I-II) heißen Antiklinen.
Die Zellen des Vegetationspunktes sind noch alle gleich. Erst in einer gewissen Entfernung von ihm beginnt der Prozeß der Differenzierung. Die Zellen nehmen ungleiche Funktion und Hand in Hand damit ungleiche Formen an. Während die embryonalen Zellen noch befähigt sind, jedes beliebige Gewebe zu erzeugen, nimmt diese Befähigung mit dem Fortschreiten der Differenzierung ab, die Zellen werden mehr und mehr in eine bestimmte Entwicklung gedrängt (Determination). Im allgemeinen ist aber bei der Pflanze die Determination keine so feste, wie beim Tier. Das sieht man vor allem aus der weiten Verbreitung der Restitution.
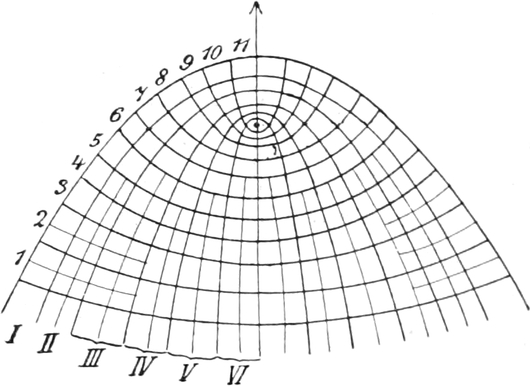
Fig. 268. Schema eines Sproßvegetationspunktes. Nach SACHS.
Was im einzelnen die Ursachen der Differenzierung und der Determination sind, ist unbekannt. Daß aber die Korrelationen bei diesen Prozessen eine große Rolle spielen, ist S. 259 ausgeführt worden.
C. Weitere periodische Änderungen in der vegetativen Gestaltung.
Während der Wachstumstätigkeit treten uns vielfach auch noch ganz andere periodische Erscheinungen entgegen. So sieht man z. B. periodische Änderungen in der Ausgestaltung der Blätter und Stengel, die nicht nur quantitativer, sondern auch qualitativer Art sind; es wechseln Laubblätter mit Nieder- und Hochblättern, Laubsprosse mit Rhizomen ab, wobei der Übergang ein allmählicher oder ein sprungweiser sein kann. Bei diesen Erscheinungen tritt uns wieder die Korrelation des Wachstums, von der S. 259 die Rede war, entgegen. Die Existenz oder besser: die Tätigkeit einer gewissen Menge von Laubblättern übt auf die weiter am Vegetationspunkt entstehenden Anlagen einen Einfluß dahin aus, daß diese zu Niederblättern, Knospenschuppen werden. Entfernt man die Laubblätter im Frühsommer, so bilden sich aus diesen Anlagen keine Niederblätter, sondern Laubblätter. In entsprechender Weise wirkt die Entfernung von Laubsprossen oft auf die unterirdischen Rhizome ein; sie veranlaßt diese aus dem Boden herauszuwachsen und an Stelle von Niederblättern Laubblätter zu bilden.
Außer Laub- und Niederblattbildung treffen wir bei manchen Pflanzen auch noch eine andere Art von Heterophyllie. Vielfach treten in der Jugend Blätter anderer Gestalt auf als später, und manchmal gelingt es, eine Pflanze zur erneuten Produktion der Jugendform zu zwingen, wenn die äußeren Bedingungen, unter denen sie sich bildete, wieder hergestellt werden. So folgen z. B. bei Campanula rotundifolia auf die schmalen Folgeblätter wieder runde Jugendblätter, wenn die Beleuchtungsintensität herabgesetzt wird. In ähnlicher Weise sind auch bei manchen Wasserpflanzen die Wasserblätter Jugendformen, die Schwimmblätter und die Luftblätter Folgeformen. Auch hier kann künstlich die Jugendform wieder hervorgerufen werden. Das ist aber nicht immer so. Manchmal wird der Vegetationspunkt selbst so stark alteriert, daß er nur noch Folgeblätter zu produzieren vermag.
Die „Schattenblätter“ (S. 253) unserer Laubbäume gelten heute in erster Linie als Jugendblätter, denn sie hängen nicht so sehr direkt von der Beleuchtungsstärke ab, als von der Stellung am Sproß. Jeder Sproß beginnt mit Schattenblättern und bildet erst später Lichtblätter. Offenbar sind also Ernährungseinflüsse bei Ausbildung dieser Blattformen maßgebend.
Wie das Blatt, so kann auch der Stengel weitgehende Umbildung erfahren. So sehen wir ihn im Laubsproß aufrecht wachsen, im Rhizom horizontal im Boden oder auf dem Boden kriechen: bei den Windepflanzen streckt er seine Internodien über das sonst übliche Maß, bei Rosettenpflanzen ist er ungewöhnlich gestaucht; auch im Dickenwachstum haben wir weitgehende Differenzen: im Extrem erscheint der Stengel als Knolle. Alle diese verschiedenen Gestalten oder Wachstumsweisen sind die Folgen ganz bestimmter Einwirkungen, sie lassen sich demnach wenigstens zum Teil willkürlich erzielen, auch zu einer Zeit und an einem Ort, wo sie in der „normalen“ Entwicklung nicht erwartet werden können.
Als ein Beispiel für die Beeinflußbarkeit des Stengels wollen wir die Knollenbildung bei der Kartoffel betrachten. Wie Fig. 201 darstellt, entwickeln sich gewöhnlich die Knollen am Ende von horizontalen Ausläufern, die ihrerseits aus der Basis des Laubtriebes im Boden entspringen. Die Knollenbildung erfolgt durch starkes Dickenwachstum am Ende der Ausläufer unter Sistierung des Längenwachstums. Wird aber der Laubtrieb rechtzeitig entfernt, so gehen statt der Knollen aus den Enden der Ausläufer gestreckte aufrechte Zweige hervor, die über den Boden gelangen und grüne Laubblätter erzeugen. Man kann also den typischen Entwicklungsgang der Kartoffel offenbar so abändern, daß es gar nicht zur Knollenbildung kommt. Andererseits lassen sich auch die Knollen willkürlich an ganz anderen Orten erzeugen; so kann z. B. bei niederer Temperatur die Hauptachse einer bestimmten Kartoffelsorte ganz kurz bleiben und sich sofort in eine Knolle verwandeln; bei anderen Sorten können Knollen nahe der Spitze der Laubsprosse, also in der Luft erzwungen werden, wenn man die Sproßspitze verdunkelt. Noch plastischer als die Kartoffel hat sich die Basellacee Boussingaultia baselloides erwiesen: hier kann man jede beliebige Knospe in eine Knolle umgestalten, und wenn Knospen fehlen, können Internodien oder Wurzeln knollig anschwellen. Es sieht so aus, als ob die Produktion einer gewissen Menge von Reservestoffen als Reiz wirke, dem die Bildung eines Reservestoffbehälters folge.
D. Lebensdauer[229].
Eine weitere hier zu besprechende Erscheinung äußert sich im Werden und Vergehen, in der Lebensdauer der Pflanze. Es gibt Pflanzen, wie Stellaria media, Senecio vulgaris, die in wenigen Wochen ihre ganze Entwicklung von der Samenkeimung bis zur Samenreife durchlaufen, bei denen auch jeder Same sofort keimen kann, so daß mehrere Generationen ohne Ruhe und unbekümmert um die Jahreszeit in einem Kalenderjahre auftreten. Mit der Ausbildung einer gewissen Anzahl von Samen stirbt die Pflanze ab; die Samen sorgen aber für die Forterhaltung ihres Typus. Ähnlich, aber doch mehr an die Jahreszeiten gebunden, sind zahlreiche „einjährige Pflanzen“; an sie schließen sich andere einmal fruchtende (monokarpische) Pflanzen an, bei denen der Ausbildung der Samen ein zwei- bis vieljähriges Stadium rein vegetativen Wachstums mit oder ohne eingeschobene Ruhezeiten vorausgeht. Vermutlich liegt bei ihnen allen in der Fruchtbildung die Ursache des Absterbens der Vegetationsorgane; denn man kann durch Verhinderung des Samenansatzes ihr Leben bedeutend verlängern. In einem Gegensatz zu ihnen stehen die Pflanzen, deren Prototyp unsere Bäume sind, die mehrfach fruchten, bei denen der Fortbestand des einzelnen Exemplars nicht mit der Samenbildung erlischt. Bei allen mehrjährigen Typen tritt nun neben der Jahresperiode noch eine andere Periodizität zutage: Ein Baum hat im ersten Jahre, als Keimpflanze, eine viel geringere Wachstumsintensität als manche Annuelle; er „erstarkt“ aber allmählich, und sein Längenwachstum, sein Dickenwachstum, selbst die Elementarorgane seines Holzkörpers nehmen immer mehr an Größe zu. Manche Bäume erreichen ein hohes Alter und sind an sich zu unbegrenztem Leben befähigt. Von einem gewissen Höhepunkt ihrer Entwicklung an, werden aber ihre Jahrestriebe wieder kleiner, offenbar weil der Stoffaustausch zwischen Wurzeln und Blättern sich immer schwieriger gestaltet. Schließlich stirbt der Baum aus diesem Grunde oder weil Parasiten oder sonstige von außen kommende Störungen ihm ein Ende bereiten. Sorgt man dafür, daß in der Nähe der Vegetationspunkte der Sprosse immer neue Wurzeln sich bilden, so werden die Sprosse mit stets gleicher Intensität wachsen, und unter diesen Umständen ist ein Ende des Wachstums nicht abzusehen. Man kann dieses Experiment nicht bei jedem Baum ausführen, weil nicht alle leicht Wurzeln bilden; mit der Weide aber gelingt es leicht, wenn man Zweige als Stecklinge behandelt. Ist somit der Tod für den Vegetationspunkt abwendbar, so treten uns bei ausgewachsenen Zellen ganz andere Verhältnisse entgegen. Lange bevor der ganze Baum zugrunde geht, sind ihm schon einzelne Teile im Tode vorausgegangen. So werden die Blätter abgestoßen, nachdem sie ein oder mehrere Jahre funktioniert haben. Manchmal werden auch ganze Äste abgeworfen. In anderen Fällen freilich gehen sie ohne Abstoßung zugrunde und zerfallen allmählich am Ort ihrer Entstehung. Aber auch alle älteren Gewebe des Stammes gehen dem Tod entgegen; die peripherischen werden in Borke verwandelt, fallen ab oder bilden eine schützende Hülle für die übrigen Teile; im Zentrum geht das Holz in Kernholz über, wobei die letzten lebenden Elemente absterben. Nur die Vegetationspunkte und die Kambien sowie ihre jüngsten Derivate sind an einem älteren Baume noch am Leben. — So sehen wir also, daß jede Zelle, die ihren embryonalen Charakter verloren hat, aus Gründen, die wir nicht kennen, nach kürzerer oder längerer Frist dem Tode verfällt. Dieses Absterben aber läßt sich im allgemeinen nicht aufhalten. Trotzdem können wir nicht sagen, daß der Tod notwendig sei. Nur dadurch, daß gewisse Zellen sich entwickeln, sterben andere ab; der Tod ist also eine Korrelationserscheinung. Entfernen wir bei restitutionsfähigen Pflanzen, bevor die Dauergewebszellen zu alt geworden sind, die Vegetationspunkte, so können ausgewachsene und somit normalerweise dem Tode verfallene Zellen wieder embryonal werden und weiter leben. Bei niederen Pflanzen, denen der Gegensatz von embryonalen und ausgewachsenen Zellen fehlt, die nur aus embryonalen Zellen bestehen, kann demnach das Wachstum ein unbegrenztes sein, der Tod kann hier nur durch ungünstige Außenfaktoren herbeigeführt werden. Es fehlt indes nicht an Beispielen dafür, daß innere Faktoren tödlich wirken; so ist z. B, eine gelegentlich beobachtete Pflanzenrasse, die kein Chlorophyll bilden kann, dem Tod verfallen. In der Vererbungslehre sind vielfach letale Faktoren bekannt geworden, d. h. innere Anlagen, die — wenn sie zur Entfaltung kommen — den Tod des Organismus herbeiführen (vgl. S. 288, Oenothera).
Am besten bekannt oder abgeschätzt ist das Alter von Bäumen[230], über deren Anpflanzung zum Teil geschichtliche Daten vorliegen, während das Alter anderer Bäume oft Jahrhunderte weit über die geschichtliche Zeit zurückreicht. Die berühmte Linde bei Neuenstadt am Kocher in Württemberg ist annähernd 700 Jahre alt, eine Littauer Linde von 25,7 m Umfang hatte 815 Jahresringe, und ein Taxus in Braburn (Kent) wurde bei 18 m Umfang auf 2880 Jahre geschätzt. Sequoia gigantea, der Mammutbaum Kaliforniens, wird nach H. MAYR 4000 Jahre alt. Berühmt durch ihr Alter ist auch eine Wasserzypresse (Taxodium mexicanum) auf dem Friedhofe von St. Maria Tule bei Oaxaca in Mexiko (Fig. 603). Einer der ältesten Bäume Deutschlands dürfte eine ungefähr 1200jährige Eiche sein, die auf dem Gut Ivenak in Mecklenburg steht und in Brusthöhe einen Umfang von fast 13 m hat. — Auch Bryophyten erreichen oft ein hohes Alter; die an der Spitze fortwachsenden verkalkten Gymnostomumrasen und die Stengel der metertief ins Torfmoor hinabreichenden Sphagnaceen zählen ihr Dasein sicher nach vielen Jahrhunderten.
E. Fortpflanzung.
Über die Organe, die der Fortpflanzung dienen, ist das Nötige schon in der Morphologie gesagt; hier sind nur die Bedingungen und die Bedeutung der Erscheinung zu berücksichtigen und dann die Eigenschaften der Nachkommen zu besprechen.
1. Die Bedingungen der Fortpflanzung[231].
In der Natur scheint die Fortpflanzung mit einer gewissen Notwendigkeit auf das vegetative Wachstum zu folgen. Sie tritt gewöhnlich ein, wenn das vegetative Wachstum nachläßt, wenn die Pflanze ein gewisses Alter erreicht hat. Tatsächlich läßt sich aber zeigen, daß diese Aufeinanderfolge nicht notwendig ist, daß der natürliche Entwicklungsgang nur dann eintritt, wenn ganz bestimmte Bedingungen gegeben sind, und daß er durch andere Einflüsse sehr stark abgeändert wird.
Die Hauptfrage, die wir hier zu studieren haben, ist diese: unter welchen Bedingungen findet das vegetative Wachstum, unter welchen die Bildung von Fortpflanzungsorganen statt? Da diese Frage noch verhältnismäßig wenig studiert ist, so läßt sich nicht gut eine allgemeine Antwort auf sie geben. Wir müssen uns also darauf beschränken, an einigen Beispielen das Wesentlichste klar zu machen.
Niedere Pflanzen. Als Beispiel betrachten wir einen Pilz aus der Gattung Saprolegnia. Diese Pilze besitzen einen einzelligen, verzweigten, chlorophyllfreien Vegetationskörper. Sie finden sich in der Natur gewöhnlich auf toten Insekten, die ins Wasser gefallen sind, und ihr Thallus durchwuchert zunächst den Insektenleib. Nach einiger Zeit wächst er aber auch allseits aus diesem heraus in das Wasser. Das Ende dieser ausstrahlenden Fäden wird in der Regel durch eine Querwand abgegliedert, und sein Inhalt zerfällt in viele Schwärmsporen, die dann austreten, sich bewegen und schließlich an einem anderen Orte zu einer neuen Saprolegnia auskeimen. Später bilden sich an der alten Pflanze Eier und Spermazellen, und die ersteren entwickeln sich wenigstens bei manchen Spezies erst nach der Befruchtung weiter. Mit der Ausbildung der befruchteten Eier pflegt die Tätigkeit des Saprolegniapflänzchens beendet zu sein, es geht allmählich zugrunde.
G. KLEBS hat nun gezeigt, daß man diesen Entwicklungsgang von Saprolegnia völlig verändern kann; unter anderem ist es gelungen, die Entwicklung in folgender Weise zu lenken:
1. Der Thallus kann jahrelang rein vegetativ weiter wachsen, wenn stets für frische, gute Nährstoffe gesorgt wird.
2. Ein derartig gut ernährter Thallus geht bei Übertragung in reines Wasser rasch und vollständig in der Bildung von Sporangien auf.
3. In Lösungen von Leucin (0,1%) und Hämoglobin (0,1%) erfolgt zuerst kräftiges Wachstum, dann Bildung von Geschlechtsorganen; Schwärmsporen werden nicht gebildet. Diese treten aber auf, und zwar nach den Geschlechtsorganen, wenn man verdünntes Hämoglobin (0,01%) verwendet.
Es zeigt sich also, daß ganz bestimmte, wohl zu definierende Bedingungen für vegetatives Wachstum, andere für die Bildung von Geschlechtsorganen, wieder andere für das Auftreten von ungeschlechtlicher Fortpflanzung existieren.
Bedingungen der Blütenbildung[232]. Bei den Phanerogamen tritt die ungeschlechtliche Vermehrung durch besondere Brutknospen usw. stark zurück gegenüber der geschlechtlichen Fortpflanzung. Diese aber ist an die Ausbildung von Blüten geknüpft. Das Auftreten von Blüten scheint in der Regel an ein bestimmtes Alter gebunden. Es liegen aber Beobachtungen genug vor, daß auch schon an ganz jungen Exemplaren Blüten auftreten können. Demnach ist zu erwarten, daß die Bildung der Blüten geradeso wie andere Organbildung durch ganz bestimmte Bedingungen gekennzeichnet ist. In einzelnen Fällen ist es denn auch gelungen, diese näher zu erforschen. Für Sempervivum Funkii z. B. hat KLEBS folgendes festgestellt:
1. Bei lebhafter Kohlenstoffassimilation in hellem Licht und bei starker Aufnahme von Wasser und Nährsalzen wächst die Pflanze unbegrenzt rein vegetativ.
2. Bei lebhafter Kohlenstoffassimilation in hellem Licht, aber bei Einschränkung der Wasser- und der Nährsalzaufnahme tritt Blütenbildung auf.
3. Bei einer mittleren Wasser- und Nährsalzaufnahme hängt es von der Intensität der Beleuchtung ab, ob Blühen oder vegetatives Wachsen eintritt. Bei schwächerer Lichtintensität (bzw. bei Verwendung von blauem Licht) erfolgt nur Wachsen, bei stärkerer Beleuchtung (bzw. bei Verwendung roten Lichts) Blühen.
KLEBS unterscheidet bei der Blütenbildung von Sempervivum drei Phasen: 1. die Herstellung des Zustandes der Blühreife, 2. die Bildung der mikroskopisch nachweisbaren Blütenanlagen, 3. die Streckung der Infloreszenz. Diese drei Phasen sind an ganz verschiedene Bedingungen geknüpft und hängen deshalb in ganz verschiedener Weise von den Außenfaktoren ab. Die Blühreife ist bedingt durch ein starkes Überwiegen der C-Assimilation über die Prozesse, bei denen Kohlehydrate konsumiert werden, wie Atmung und vegetatives Wachstum. Da hohe Temperatur die Atmung steigert, Nährsalze das vegetative Wachstum fördern, so ergibt sich neben starker Beleuchtung niedrige Temperatur und Einschränkung der Nährsalze als notwendig für die Erzielung der Blühreife. Schon bestehende Blühreife kann durch hohe Temperatur vernichtet werden, sie kann durch niedere Temperatur selbst im Dunkeln lange konserviert und noch gesteigert werden. Wirkt somit in diesem Fall das Licht anscheinend nur, insofern es die Assimilation der CO2 bedingt, so hat es bei der zweiten Phase eine ganz andere Bedeutung: eine gewisse Dauer der Beleuchtung ist hier ganz unerläßlich, und zwar sind ausschließlich die langwelligen Strahlen wirksam, während kurzwellige sogar den Zustand der Blühreife wieder vernichten. — In der Natur ist der blühreife Zustand schon im Herbst erreicht, es fehlt aber an einer genügend langen und intensiven Beleuchtung. Wird eine Dauerbelichtung mit Osramlampen, die reich an roten Strahlen sind, durchgeführt, so tritt die Blütenbildung um Monate verfrüht ein; je intensiver die Lichtquelle ist, desto kürzer kann die Belichtung sein. Je früher im Winter man diese Bestrahlung durchführt, desto länger muß sie sein; gegen Ende des Winters ist durch die dauernde Abkühlung der Zustand der Blühreife so weit gediehen, daß eine kurze Bestrahlung die Blüte bewirkt. Pausen, die in die Dauerbelichtung eingeschaltet werden können, dürfen nicht zu lang sein, sonst heben sie die Wirkung der Lichtperiode auf. — Die letzte Phase der Streckung endlich hängt wieder wie die erste nur von der ernährenden Wirkung des Lichtes ab; dementsprechend kann sie bei genügender Vorernährung auch im Dunkeln wenigstens zum Teil eintreten.
Eine ähnlich tiefdringende Analyse der Bedingungen des Blühens liegt bei anderen Objekten bisher noch nicht vor, doch lassen zahlreiche Beobachtungen und Versuche erkennen, daß allgemein das Licht, die Temperatur, die Nährsalze in erster Linie von Bedeutung für die Blütenbildung sind. Da dieselben Faktoren auch im vegetativen Leben unentbehrlich sind, so ist es nur das Maß, in dem sie gegeben sind, und vor allem ihre relative Menge, die darüber entscheidet, ob eine bestimmte Knospe zur Blüte wird oder vegetativ wächst.
Die Bedeutung des Lichtes für die Blütenbildung ergibt sich z. B. aus der lange bekannten Tatsache, daß der Efeu nur an hellem Standort, nicht aber im Schatten des Waldes blüht, obwohl er an letzterem Orte gut gedeiht. Das gleiche beweisen VOECHTINGs Versuche mit Mimulus Tilingii. Diese Pflanze stellt bei einer gewissen niederen Lichtintensität, die ihr vegetatives Wachsen noch gut erlaubt, die Blütenbildung gänzlich ein. Entsprechende Versuche hat KLEBS z. B. mit Veronica chamaedrys ausgeführt, und er gibt an, daß bei allen Pflanzen, die keine nennenswerten Massen von Reservestoffen führen, eine Lichtverminderung die Blütenbildung unterdrückt. Er betrachtet die vom Licht bewirkte Kohlenstoffassimilation als in erster Linie maßgebend für die Blütenbildung. — Bei einer gewissen Lichtintensität, die zur Ausbildung normaler Blüten nicht mehr ausreicht, entstehen bei manchen Pflanzen kleistogame Blüten.
Auch die Temperatur spielt offenbar eine wichtige Rolle. Eine andauernd hohe Temperatur verhindert das Blühen. So wachsen Pflanzen unserer Klimate in den Tropen eventuell dauernd vegetativ (Kirsche), und zweijährige einheimische Pflanzen, wie Rübe, Digitalis, kann man auch im zweiten Jahr am Blühen hindern, wenn man sie im Winter warm hält und weiter wachsen läßt. So ist es KLEBS gelungen, die Rübe mehrere Jahre lang rein vegetativ zu erhalten. Auch Glechoma, Sempervivum wuchsen, wenn sie an der Winterruhe verhindert waren, jahrelang vegetativ.
Endlich sind noch die Nährsalze zu erwähnen. Keimpflanzen können durch Nährsalzentziehung zu kümmerlichen Hungerpflänzchen gemacht werden, bei denen oft nach wenigen winzigen Laubblättern schon die Blütenbildung beginnt. Auch Versuche von MOEBIUS haben gezeigt, daß Gräser und Borrago bei geringer Salzzufuhr besser blühen als bei starker Düngung. Die Erhöhung der Fruchtbarkeit der Obstbäume, die man durch Beschneiden der Wurzeln erzielt, dürfte ebenfalls auf einer Einschränkung der Nährsalzaufnahme beruhen. Daß aber nicht alle Nährsalze in gleicher Weise wirken, hat besonders BENECKE betont, der nachweisen konnte, daß Verminderung der Stickstoffnahrung, Vermehrung des Phosphors zur Blütenbildung führt.
Werden, nachdem die Blütenbildung begonnen hat, wieder die Bedingungen für vegetatives Wachstum hergestellt, so kann ein schon zur Blüte prädisponierter Sproß zu vegetativem Wachstum zurückkehren. So bleiben, wenn Mimulus Tilingii in schwaches Licht gebracht wird, die bereits angelegten Blütenknospen unentwickelt, und ruhende Achselknospen der Brakteen entwickeln sich zu Laubsprossen. Es tritt eine Gestaltung der Pflanze ein, die außerordentlich stark vom gewohnten Aussehen abweicht.
Geschlechtsbestimmung. Die große Mehrzahl der Blüten sind Zwitterblüten, produzieren also sowohl männliche als auch weibliche Sexualzellen. — In anderen Fällen sehen wir eingeschlechtige Blüten allein oder neben den zweigeschlechtigen auftreten. Schon der Umstand, daß dann die weiblichen Blüten meist an anderen Stellen der Pflanzen sich finden als die männlichen, weist darauf hin, daß jede dieser Formen ihre spezifischen Bildungsbedingungen hat; welche diese sind, ist freilich unbekannt.
Ein Problem der Entwicklungsphysiologie wird die Geschlechtsbestimmung aber ganz besondere dann, wenn wir es mit sog. zweihäusigen Pflanzen zu tun haben, d. h. mit solchen, die in nur männlichen oder nur weiblichen Exemplaren vorkommen. Vgl. S. 284.
Die Befruchtung. Wenn Eizelle und Spermazelle verschmolzen sind, umgibt sich das Produkt allgemein mit einer Membran. Bei niederen Pflanzen entsteht so eine Zygospore oder Oospore, die gewöhnlich erst nach einer Ruheperiode keimt. Bei den höheren Pflanzen tritt sofort Wachstum und Zellteilung ein; es entsteht ein Embryo, der bei Moosen und Farnen alsbald in bestimmter Weise sich weiter entwickelt, während er bei den Phanerogamen nach kurzer Zeit in einen Ruhezustand verfällt. Zuvor geht von ihm aber noch eine Fülle von Reizwirkungen aus, die namentlich bei den Angiospermen hoch entwickelt sind. Die Samenanlage, in der der Embryo eingeschlossen ist, fängt an zu wachsen, sie vergrößert sich beträchtlich und erhält eine ganz charakteristische Struktur; sie wird zum Samen, der in der Regel erst nach Ablauf einer Ruheperiode keimt. Aber auch der Fruchtknoten fängt nach der Befruchtung lebhaft zu wachsen an und entwickelt sich zur Frucht.
Diese durch die Embryobildung ausgelösten Wachstums- und Gestaltungsvorgänge in Samenanlage, Fruchtknoten und eventuell auch noch in anderen Teilen der Blüte sind als Korrelationserscheinungen zu deuten; denn falls die Befruchtung verhindert wird, unterbleiben meist alle die Veränderungen, die aus der Blüte eine reife Frucht hervorgehen lassen: es tritt vielmehr eine andere korrelative Wirkung, die Abstoßung des ganzen, nun nutzlosen Organs, ein. Einzelne Pflanzen, zumal solche, die schon lange in Kultur genommen sind, können freilich eine Ausnahme machen; bei fast allen Varietäten von Bananen, bei der echten kernlosen Mandarine und den als Sultaninen bezeichneten Rosinen z. B. unterbleibt die Bildung der Embryonen; trotzdem aber entwickeln sich die Früchte. Der Anstoß zu dieser Entwicklung kann auch hier entweder von der bloßen Bestäubung der Narbe oder doch von der Befruchtung der Samenanlagen ausgehen, welch letztere dann aber früher oder später verkümmern, ohne der sonstigen Entwicklung der Frucht Eintrag zu tun. In manchen Fällen entwickeln sich sog. „taube“ Früchte aber auch ganz ohne den Anstoß der Bestäubung, wie die parthenokarpen[233] Früchte der Feige, der Gurke und gewisser Apfel- und Birnsorten.
Auch von Pollenkörnern und Pollenschläuchen, die sich auf der Narbe befinden, können Einflüsse ausgehen, die weithin geleitet werden. So tritt nach Bestäubung der Narbe der Orchideen vielfach ein Verschwellen der Narbe und des Gynostemiums ein, und es wird auch das Perianth plötzlich in seinem Wachstum gehemmt und zum Welken gebracht. Wie FITTING[234] zeigen konnte, geht diese Wirkung von löslichen, organischen, hitzebeständigen Substanzen aus, die leicht von der ungekeimten Pollenmasse getrennt werden können.
Mag nun eine einfache Spore oder ein komplizierter Embryo die Folge der Befruchtung sein, so unterscheidet sich dieses Produkt von den Zellen, die es bildeten, stets dadurch, daß es doppelte Kernmassen, also die doppelte Anzahl von Chromosomen aufweist (S. 172). Deshalb ist eine bald früher, bald später eintretende Reduktionsteilung, die wieder die einfache Zahl der Chromosomen herstellt, stets die notwendige Folge der Befruchtung.
2. Die Bedeutung der sexuellen Fortpflanzung.
Die Bedeutung der sexuellen Fortpflanzung ist nicht ohne weiteres zu erkennen. Viele Pflanzen kommen in der Natur oder in der Kultur ganz ohne sie aus und begnügen sich mit vegetativer Fortpflanzung.
Auf niedere Pflanzen, die noch gar keine sexuelle Fortpflanzung besitzen, ist schon hingewiesen (S. 165). Von höheren Pflanzen bringen z. B. die kultivierten Bananen, manche Dioscoreaceen, der Kalmus, Spielarten der Weinrebe, der Apfelsinen, Gartenerdbeeren überhaupt keine sexuellen Nachkommen mehr hervor. Der Knoblauch, der an Stelle der Blüten kleine Zwiebelchen bildet, die weiße Lilie und der durch Wurzelknöllchen sich vermehrende Ranunculus Ficaria u. a. bilden, falls sie ungestört ihre vegetativen Vermehrungsorgane zu entwickeln vermögen, kaum noch keimfähige Samen aus. Solche können aber unter Umständen, so z. B. manchmal an abgeschnittenen Blütenständen jener Pflanzen, noch gewonnen werden. Für gewöhnlich vermehren sie sich ausschließlich durch ungeschlechtliche Sprossung. Irgend eine Degeneration, die man früher bei ausschließlich vegetativer Vermehrung für unvermeidlich hielt, ist dabei nicht zu bemerken[235].
Wenn demnach die monogene Fortpflanzung für die Erhaltung der Art genügt, so muß doch die digene irgend etwas bieten, was die monogene nicht leistet; es wäre sonst unbegreiflich, daß die digene überhaupt entstanden ist, da sie ja viel komplizierter eingerichtet ist und viel weniger sicher zum Ziel führt als die vegetative Fortpflanzung.
Bei einseitiger Betrachtung der Algen und Pilze könnte man glauben, die sexuelle Fortpflanzung führe zur Ausbildung besonders widerstandsfähiger Keime, die demnach eine längere Ruhezeit unter ungünstigen Vegetationsverhältnissen überdauern können; denn tatsächlich sind die Zygosporen und Oosporen häufig sehr viel resistenter als die Schwärmsporen und Konidien. Aber schon bei den Farnen kehrt sich das Verhältnis um, die befruchtete Eizelle muß sofort die Bedingungen zur Weiterentwicklung finden, widrigenfalls sie zugrunde geht; dagegen ertragen die ungeschlechtlichen Sporen eine lange Ruhe.
Sehr häufig finden wir bei der digenen Fortpflanzung, daß die einzelne Sexualzelle entwicklungsunfähig ist. Erst durch die Verschmelzung wird früher oder später die Entwicklung ausgelöst. Demnach liegt eine Bedeutung der Befruchtung in der Aufhebung einer bestehenden Wachstumshemmung. Man kann sich aber nicht vorstellen, daß das ihre ursprüngliche und wesentliche Bedeutung ist. Viel wahrscheinlicher ist es, daß die Sexualzellen erst allmählich die Entwicklungsunfähigkeit erworben haben, weil durch diese die Verschmelzungsmöglichkeit gesichert wurde. Wenn jede Sexualzelle sofort nach ihrer Bildung wüchse, so würde sie in der Mehrzahl der Fälle zu wachsen beginnen, ehe sie mit einer anderen Sexualzelle verschmelzen konnte.
Diese Auffassung wird gestützt durch das Verhalten mancher Algen, bei denen nicht selten die Sexualzellen auch ohne Verschmelzung zu keimen vermögen; insbesondere können sich die Eizellen bei ihnen ohne Befruchtung weiter entwickeln. Im Anschluß an ähnliche Vorgänge im Tierreich nennt man diese Erscheinung Parthenogenesis. Bei den primitiven Algen ist Parthenogenesis möglich, weil hier die Entwicklungsunfähigkeit der Eizelle noch nicht erworben ist oder weil sie durch verschiedene Einwirkungen leicht behoben werden kann. So tritt z. B. bei der Alge Protosiphon durch hohe Temperatur parthenogenetische Entwicklung ein, und bei den Eiern niederer Tiere (Echinodermen) findet sich das gleiche z. B. nach Behandlung mit Lösungen von einer gewissen Konzentration. Man wird vielleicht vermuten dürfen, daß in den Fällen, wo die Entwicklung nur nach Befruchtung erfolgt, eine in der Spermazelle enthaltene Substanz die Entwicklung anregt.
Es fehlt freilich auch bei höheren Pflanzen nicht an Vorkommnissen, die man als Parthenogenesis[236] bezeichnen kann. So entwickelt sich die Eizelle mancher Kompositen, ferner bei Alchimillen, Thalictrum purpurascens, Wickstroemia indica, Ficus hirta, Marsilia Drummondii und Chara crinita ohne vorhergehende Befruchtung. Von den eben besprochenen Vorkommnissen unterscheiden sich aber diese Fälle dadurch, daß die betreffenden Eizellen in der Chromosomenzahl ihrer Kerne wie vegetative Zellen sich verhalten, diploid (S. 172) sind und überhaupt nicht für die Befruchtung eingerichtet zu sein scheinen (vgl. den speziellen Teil).
Wir kommen also zu der Überzeugung, daß in der Aufhebung einer bestehenden Entwicklungshemmung das Wesentliche der sexuellen Fortpflanzung nicht bestehen kann. Somit werden wir es in der Verschmelzung der Substanz zweier Zellen, in der dadurch bedingten Mischung väterlicher und mütterlicher Eigenschaften zu suchen haben. In diesem Punkt liegt jedenfalls der Hauptunterschied zwischen den beiden Fortpflanzungsarten: die vegetativ erzeugte Nachkommenschaft besteht aus unvermischten Abkömmlingen, die sexuell erzeugte aus Mischlingen. Der in den Nachkommen entfaltete Komplex von Eigenschaften weicht deshalb bei vegetativer Vermehrung von dem der Stammform in der Regel nicht ab. Die Varietäten, Sorten und Rassen vieler Kulturpflanzen können deshalb in der Regel nur durch Pfropfung oder Stecklingsbildung vermehrt werden. Im Gegensatz zu den vegetativen Abkömmlingen wird der sexuelle Nachkomme gewöhnlich der Mutterpflanze nicht völlig ähnlich sein können, sondern die Eigenschaften beider Eltern in sich vereinigen müssen. Je abweichender diese voneinander waren, desto größer wird der sichtbare Erfolg der Vermischung ausfallen.
F. Vererbung, Variabilität, Artbildung.
Vererbung[237]. Unter Vererbung versteht man die allbekannte Erscheinung, daß die Eigenschaften der Eltern sich bei den Nachkommen wieder finden. Eine solche Vererbung tritt uns ebenso bei der Zweiteilung einer Zelle, der einfachsten Form der Fortpflanzung, entgegen wie beim komplizierten Sexualakt. Daß die Tochterzellen der Mutterzelle gleichen, bedarf keiner Erklärung: ein Problem wird die Vererbung erst dann, wenn aus kleinen Teilen eines kompliziert gebauten Mutterorganismus, aus Keimen, die Nachkommen durch Entwicklung hervorgehen. Man schreibt solchen Keimen bestimmte „Anlagen“ oder „Gene“ zu, die es bewirken, daß ein Organismus in ganz bestimmter, spezifischer Weise auf äußere Faktoren reagiert. Daß diese Anlagen an die Chromosomen der Zellkerne gebunden sind, ist wahrscheinlich; über die Art und Weise aber, wie sie den Entwicklungsgang beeinflussen, wissen wir nichts.
Auch in den Sexualzellen der höheren Pflanzen müssen solche Anlagen vorhanden sein, und zwar sowohl in den männlichen wie in den weiblichen. Demnach muß also die befruchtete Eizelle die doppelte Anzahl von Anlagen besitzen — und dennoch geht nur ein einziger Organismus aus ihr hervor. Doch nicht nur in den Keimzellen, sondern in allen Zellen der Pflanze finden sich wenigstens ursprünglich die gleichen Anlagen; das zeigen uns die Erscheinungen der Restitution.
Zweifellos sind die Probleme der Vererbung am interessantesten bei der sexuellen Fortpflanzung, wo vor allem die Frage nach dem Anteil der beiden Eltern an der Gestaltung der Nachkommen von Bedeutung ist. Diese Frage aber kann nur an den Bastarden gelöst werden, weil die einzelnen Individuen einer reinen Art die gleichen Anlagen haben.
Bastarde[238]. In der Regel ist eine erfolgreiche Vereinigung der Sexualzellen nur dann möglich, wenn sie beide der gleichen „Art“ angehören. Unter Umständen können aber auch Sexualzellen differenter Rassen, Arten, ja selbst Gattungen verbunden werden. Die Produkte solcher Befruchtung werden Bastarde (auch Hybriden oder Blendlinge) genannt. Man bezeichnet sie auch als Heterozygoten, aus zwei ungleichen Sexualzellen entstandene Individuen, im Gegensatz zu den Homozygoten, die aus Sexualzellen mit ganz identischen Anlagen entstehen. Je näher sich die Formen stehen, desto leichter bilden sie im allgemeinen auch Hybriden, doch ist das keine durchgängige Regel.
Seitdem man weiß, daß nicht nur die Eizelle, sondern auch der Embryosackkern mit einer Spermazelle verschmilzt, kann man auch die sog. Xenienbildung verstehen. Xenien sind aus verschmolzenen heterozygotischen Kernen entstandene Bastardendosperme.
Manche Familien neigen sehr zur Bastardbildung (Solanaceen, Caryophyllaceen, Iridaceen usw.), andere bilden nur schwierig oder überhaupt keine Bastarde (Papilionaceen, Koniferen, Convolvulaceen usw.). Auch verwandte Gattungen und Arten verhalten sich oft recht verschieden; Arten von Dianthus, Nicotiana, Verbascum, Geum sind leicht, die Arten von Silene, Solanum, Linaria, Potentilla dagegen schwer untereinander zu bastardieren. Eine Hybridisierung von nahe verwandten Arten will oft nicht gelingen, während fernerstehende gekreuzt werden können.
Auch in der freien Natur findet man Bastarde; insbesondere in den Gattungen Salix, Rubus, Hieracium und Cirsium ist das der Fall. Daß hybride Formen hier nicht häufiger sind, liegt einmal am Mangel zeitlicher oder räumlicher Gelegenheit zur Bastardierung, andererseits aber auch daran, daß der Pollen der eigenen Art bei gemischter Bestäubung meist allein zur Wirkung kommt.
Bastarde kann man oft daran erkennen, daß sie Zwischenformen der beiden verschiedenen Stammeltern sind; sie halten entweder zwischen beiden genau die Mitte, z. B. Nicotiana rustica × Nic. paniculata und Sorbus Aria × aucuparia (Fig. 269), oder gleichen in manchen Eigenschaften mehr dem Vater, in anderen mehr der Mutter. Selten nur kommt es vor, daß der Bastard bis auf verschwindende Merkmale wieder ganz dem Vater (gewisse Erdbeerbastarde) oder ganz der Mutter ähnlich ist. In weitaus den meisten Fällen fällt der Bastard ganz gleich aus, einerlei ob die Pflanze A Vater oder Mutter ist; in einzelnen Fällen aber ist der Bastard A × B von A × B deutlich verschieden.
Häufig ist die Durchdringung der Eigenschaften bei den Bastarden eine vollständige. Hat die eine Art ganzrandige Blätter, die andere Art gefiederte, so kann der Bastard eine Mittelform, nämlich eichenähnlich (Fig. 269) gebuchtete Blätter besitzen. Hat die väterliche Art rote Blüten, die mütterliche aber gelbe, so kann der Bastard orangefarbige Blüten hervorbringen. Wird eine frühblühende Form mit einer spätblühenden gekreuzt, so kann die Blütezeit des Bastards in der Mitte liegen usw. — Es gibt aber auch, freilich seltener, eine andere Art von Bastarden, die man Mosaikbastarde genannt hat, bei denen Teile mit den Eigenschaften der Mutter abwechseln mit solchen, die die Eigenschaften des Vaters aufweisen.
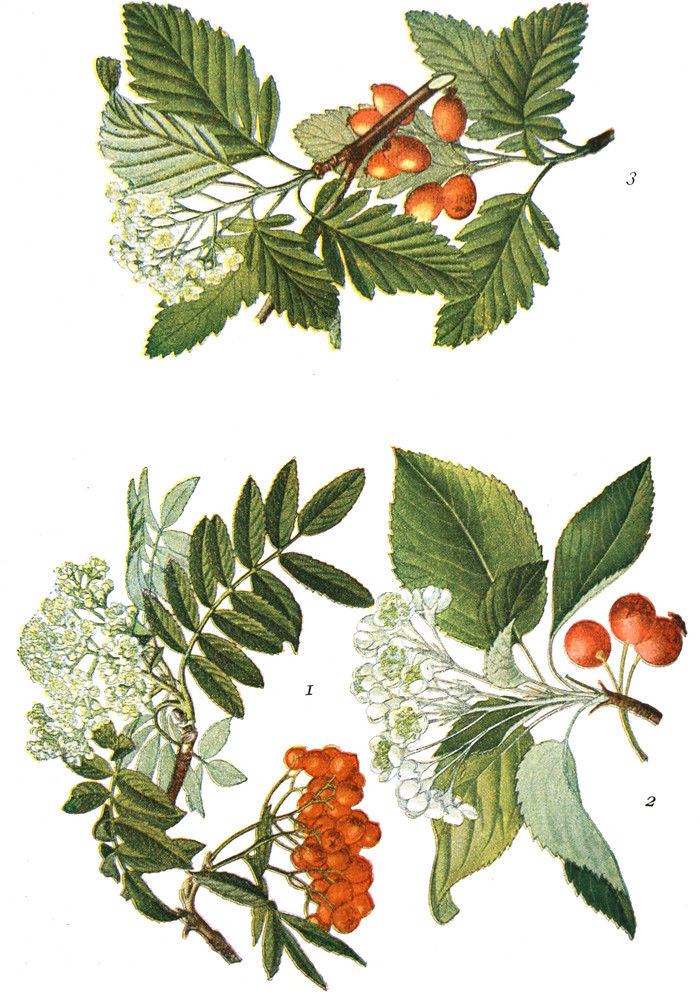
Fig. 269. 1 Sorbus aucuparia, 2 Sorbus Aria und 3 ihr Bastard. Nach SCHLECHTENDAL, LANGETHAL und SCHENCK. (Flora v. Deutschl. 5. Aufl. von HALLIER.
⇒ GRÖSSERES BILD
Bei Bastarden treten auch bemerkenswerte neue Eigenschaften auf, verringerte Fruchtbarkeit, größere Neigung zu Abänderungen (Varietätenbildung) und oft eine üppigere Gestaltung („luxurierendes Wachstum“).
Die Fruchtbarkeit ist oft so weit herabgesetzt, daß Bastarde zum Teil überhaupt nicht blühen (Rhododendron, Epilobium) oder doch unfruchtbar sind (daher „Blendlinge“) und sich sexuell nicht fortpflanzen; die Unfruchtbarkeit ist im allgemeinen um so größer, je weiter die Stammeltern in der Verwandtschaft auseinander standen; andere, wie Salix- und gewisse Hieraciumbastarde, bleiben dagegen fruchtbar.
Bastarde auch von nahe verwandten Arten bilden häufig kräftigere Vegetationsorgane, blühen früher, länger und reichlicher als die Stammeltern; dabei sind die Blüten oft größer, prächtiger und zur Füllung geneigt. Dieses luxurierende Wachstum und die gesteigerte Neigung zu Abänderungen machen die Bastarde ganz besonders wertvoll für die Gärtnerei und die Landwirtschaft.
Vererbung von Bastarden[239]. Dem ersten Forscher, der Bastarde experimentell zu wissenschaftlichen Zwecken erzog, JOSEPH GOTTLIEB KÖLREUTER (1761), waren diese aus ganz anderen Gründen von Interesse als uns heutzutage. Sie waren ihm ein unwiderleglicher Beweis für die Sexualität der Pflanzen, an der man so oft gezweifelt hatte. Heute sind die Vererbungsfragen, die sich an die Bastarde knüpfen, in erster Linie wichtig. Für das Studium der Vererbung aber sind Artbastarde viel zu kompliziert. Dagegen ist es bei Benutzung nächst verwandter Formen zuerst 1866 GREGOR MENDEL in Brünn gelungen, gewisse Gesetzmäßigkeiten zu entdecken, die unbeachtet blieben und erst, nachdem sie dann 1900 gleichzeitig von DE VRIES, CORRENS und TSCHERMAK wiederentdeckt worden waren, die wissenschaftliche Welt bewegten. Um zu diesen Gesetzen oder Regeln zu gelangen, mußte MENDEL die Bastarde in mehreren aufeinander folgenden Generationen verfolgen und mußte alle auftretenden Individuen statistisch betrachten.
1. Uniformität der Bastarde. In der ersten Generation sind alle Bastardpflanzen untereinander völlig gleich. Im Einzelfall können sie dabei entweder eine genaue Mittelbildung zwischen den Eltern vorstellen (intermediäre Vererbung), oder sie können ganz oder vorwiegend dem einen Elter gleichen (dominierende Vererbung).
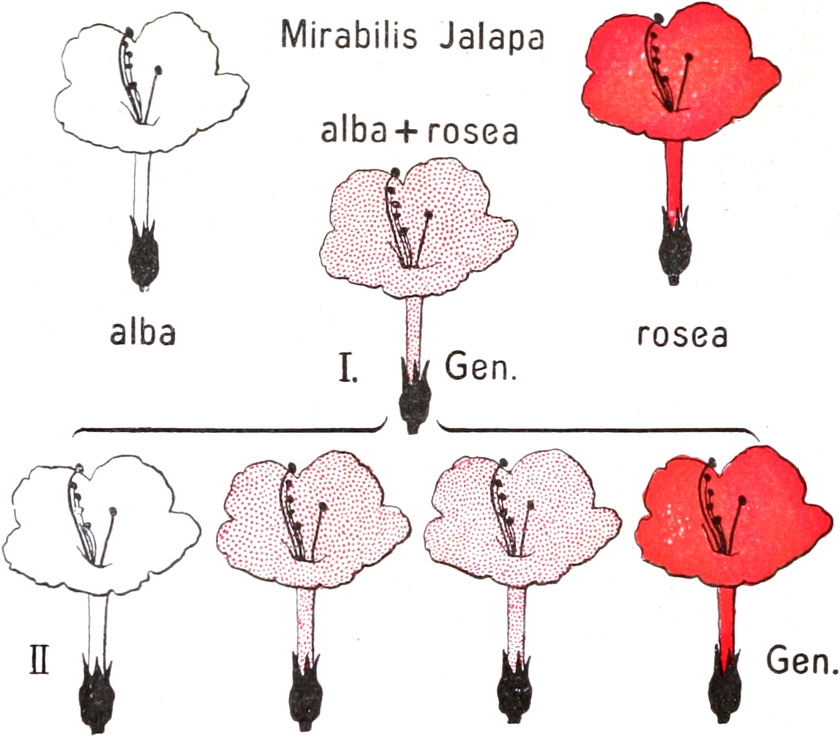
Fig. 270. Mirabilis Jalapa alba und rosea nebst ihrem Bastard in erster und zweiter Generation. Schema nach CORRENS.
Ein Beispiel für intermediäre Vererbung liefern die Bastarde von Mirabilis Jalapa rosea und alba, zwei Rassen der Wunderblume, die sich nur darin unterscheiden, daß die eine rote, die andere weiße Blüten besitzt. Der Bastard hat hellrote Blüten (Fig. 270). — Der andere Fall wird z. B. vom Bastard zwischen zwei Brennesseln geliefert, Urtica pilulifera und Dodartii, von denen die erste scharf gesägte, die zweite nur schwach gezackte Blätter besitzt. Hier ist die erste Bastardgeneration nicht von Urtica pilulifera zu unterscheiden, da alle Pflanzen mit scharf gesägten Blättern vorsehen sind (Fig. 271). Es bedurfte einer besonderen, gründlichen Untersuchung von CORRENS, um nachzuweisen, daß wenigstens in der Jugend ein kleiner Unterschied zwischen diesen Bastardpflanzen und reiner pilulifera besteht. In diesem Falle sagt man, Urtica pilulifera „prävaliert“ oder „dominiert“, während Dodartii sich „rezessiv“ verhält. — Welche Merkmale bei der Kreuzung prävalieren werden, läßt sich nicht voraussagen, sondern nur durch Erfahrung bestimmen; meist sind es phylogenetisch ältere Merkmale, die prävalieren.
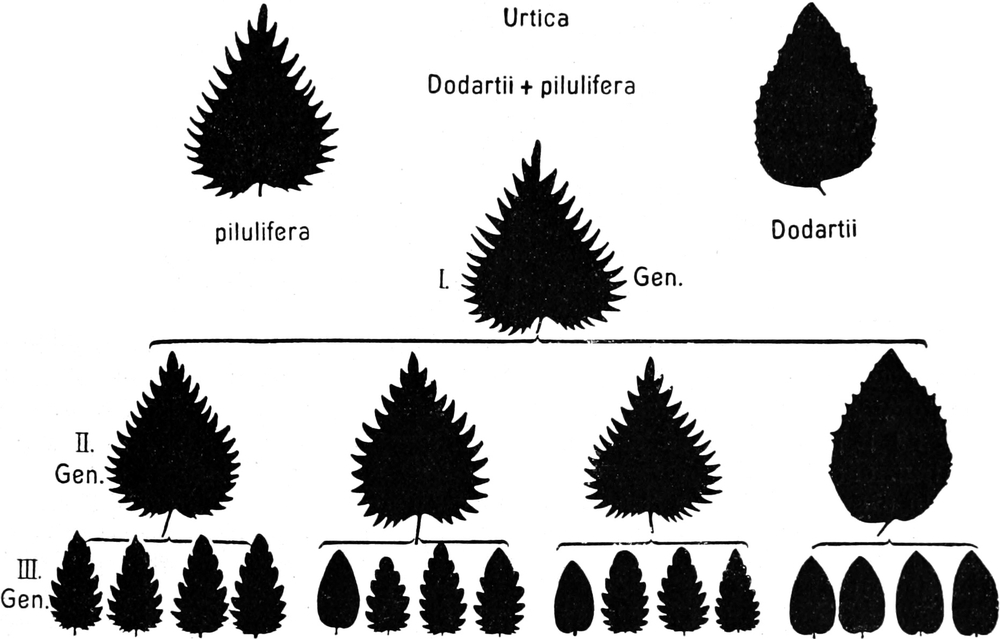
Fig. 271. Der Bastard von Urtica pilulifera und Urtica Dodartii in drei Generationen nebst den Eltern. Schema nach CORRENS.
2. Spaltungsregel. In der zweiten Generation der Bastardpflanzen, die durch Bestäubung der Blüten erster Generation mit ihrem eigenen Pollen oder dem von gleichen Pflanzen entsteht, tritt nun aber eine große Überraschung auf. Die zweite Generation ist nicht mehr gleichförmig, sondern besteht aus verschiedenen Pflanzen. In den einfachen Fällen von Mirabilis oder Urtica, wo die Eltern nur in einem einzigen Merkmal sich unterschieden, ist die Gesetzmäßigkeit der zweiten Bastardgeneration leicht zu erkennen: es treten bei Mirabilis dreierlei Pflanzen in ganz bestimmten Zahlenverhältnissen auf, nämlich 50%, die so aussehen wie die I. Bastardgeneration, 25% die der einen und 25% die der anderen Elternpflanze gleichen. Es blühen demnach 50% rosa, 25 rot und 25 weiß. Der Bastard ist also wenigstens zum Teil, hier zur Hälfte, wieder auseinander gefallen, indem ein Viertel reine Vaterpflanzen, ein anderes Viertel reine Mutterpflanzen und nur noch die Hälfte Bastarde sind. Daß diese Deutung richtig ist, ergibt die III. und alle folgenden Generationen, in denen bei weiter fortgesetzter Inzucht in der Tat alle Nachkommen der in Generation II weiß oder rot blühenden Pflanzen unverändert bleiben, während die Nachkommen der rosablütigen weiter im gleichen Verhältnis zerfallen. Diesen Zerfall nennt man das Spalten der Bastarde. In den folgenden Generationen treten die Mischlinge mit rosa Blüten der Zahl nach natürlich immer mehr gegen die roten und weißen Pflanzen zurück, so daß sie in der 8. Generation nur noch 0,75% ausmachen; dieser kleine Rest aber „spaltet“ weiter.
Bei Dominanz des einen Merkmals gestaltet sich das Spalten, wie das Schema der Fig. 271 für Urtica zeigt, etwas anders. In der II. Generation gleichen 25% Urtica Dodartii; da sie auch in den folgenden Generationen unverändert bleiben, so sind sie reine U. Dodartii. 75% aber gleichen Urtica pilulifera. Sie sind indes nicht einheitlich; ein Drittel von ihnen ist reine Urtica pilulifera, zwei Drittel sind Mischlinge, die in den folgenden Generationen in der gleichen Weise spalten wie in der II., also im Verhältnis 3 : 1.
Theoretisch sucht man seit MENDEL die Spaltungsregel durch die Annahme zu verstehen, daß in den Mischlingen beiderlei Anlagen unverändert weiter bestehen und sich bei der Ausbildung der Geschlechtszellen zu gleichen Teilen auf diese verteilen. Die Geschlechtszellen der rosa blühenden Mischlinge besäßen demnach keinen Mischlingscharakter mehr, sondern hätten sich in rein „rote“ und rein „weiße“ Geschlechtselemente geschieden. Bei der Befruchtung wird dann die zu neuen Mischlingen führende Verbindung rot × weiß (weiß × rot , rot × weiß ) doppelt so oft möglich sein als die Verbindung rot × rot oder weiß × weiß.
In sehr anschaulicher Weise werden die Tatsachen der Vererbung durch Symbole dargestellt. Man bezeichnet die einzelnen Anlagen oder Gene mit Buchstaben. Hat also eine bestimmte Pflanze die Gene A, B, C, D,... X, so wird ein durch Reinzucht erzeugter Nachkomme die „Erbformel“ AA, BB, CC, DD... XX besitzen, denn er hat ja jeweils von Vater und Mutter die gleichen Anlagen mitbekommen. Unterscheiden sich aber die zwei geschlechtlich verschiedenen Keimzellen in einem Gen, so wird in diesem dann der Nachkomme heterozygot sein. Nennen wir die Anlage für Rotfärbung bei Mirabilis R (rot), so wird durch r das entsprechende nichtrote, also weiße Gen bezeichnet.
In diesem Fall könnte man ebensogut der Anlage für weiß den großen Buchstaben geben und rot als nicht weiß mit kleinen Buchstaben bezeichnen. Wenn aber Dominanz besteht, bezeichnet man stets das dominierende Merkmal mit großem, das rezessive Merkmal mit kleinem Buchstaben.
Indem man dann alle Merkmalspaare, in denen Gleichheit besteht, wegläßt, nimmt das Symbol für die Vererbung folgende Gestalt an:
Eltern RR (rot) rr (weiß)
Deren Geschlechtszellen 100% R 100% R 100% r 100% r

Bastard I. Generation Rr (rosa)
Dessen Geschlechtszellen 50% R 50% R 50% r 50% r
Deren Kombinationen RR, Rr, rR, rr.
Aus der letzten Zeile kann man also die Spaltung, die in der II. Generation eingetreten ist, direkt ablesen: 25% RR müssen rot, 25% rr weiß blühen; beide sind Homozygoten; 50% aber sind Heterozygoten rR, blühen rosa und spalten weiter. Wenn aber rot über weiß dominierte, so würde man ebenfalls aus dieser Zeile ablesen können, daß 25% weiße und 75% rote Blüten in der II. Generation auftreten müssen, und daß von letzteren 1⁄3 homozygotisch, 2⁄3 heterozygotisch sind.
3. Autonomie der Merkmale. Waren die Eltern in zwei Merkmalen statt in einem voneinander verschieden, liegen also statt Monohybriden sog. Dihybriden vor, so zeigt es sich, daß die einzelnen Merkmale beim Spalten unabhängig voneinander sich verteilen können (Autonomie der Merkmale). Dementsprechend können neue Kombinationen der Merkmale in den Nachkommen auftreten, was ebenso für die Pflanzenzüchtung wie für das Verhalten der Pflanze in der Natur von großer Bedeutung ist. Aus der Kreuzung einer Maissorte mit glatten, weißen und einer zweiten mit runzligen, blauen Körnern erhält man als neue Kombinationen glatte blaue und runzlige weiße Körner.
Dieses Resultat läßt sich leicht aus der nachstehenden symbolischen Darstellung entnehmen. Da glatt über runzlig dominiert, bezeichnen wir glatt mit G, runzlig mit g; da blau über weiß dominiert, schreiben wir B blau und b weiß.
Eltern: Gb gB
I. Generation: Gg glatt, Bb blau
Keimzellen: GB Gb gB gb
Kombinationen dieser Keimzellen:
GB GB glatt blau GB Gb glatt blau GB gB glatt blau GB gb glatt blau
Gb GB glatt blau Gb Gb glatt weiß Gb gB glatt blau Gb gb glatt weiß
gB GB glatt blau gB Gb glatt blau gB gB runzlig blau gB gb runzlig blau
gb GB glatt blau gb Gb glatt weiß gb gB runzlig blau gb gb runzlig weiß
Man entnimmt diesem Schema, daß eine Spaltung in folgenden Verhältnissen eingetreten ist:
9 glatt blau: 3 glatt weiß: 3 runzlig blau: 1 runzlig weiß,
auch zeigt das Symbol, daß nur 4 von den 16 Kombinationen homozygotisch sind, nämlich
GB Gb gB gb
GB Gb gB gb.
Die 12 anderen sind Heterozygoten und spalten in der Folge.
Das wichtigste Resultat, das man diesen Vererbungsforschungen entnehmen kann, ist: daß zwei Organismen bei ganz verschiedenem Gehalt an Anlagen doch ganz gleich aussehen können; nicht das Aussehen, sondern nur die Vererbungsanalyse kann also den Gehalt an Anlagen aufdecken.
Rückkreuzung. Das Ergebnis einer Rückkreuzung eines Bastardes mit einer der Stammarten läßt sich am einfachsten unter Verwendung unserer Symbole verstehen. Wenn wir eine Pflanze AA mit einem Bastard Aa kreuzen, so bildet AA nur einerlei Geschlechtszellen A, während der Bastard Aa Geschlechtszellen A und a bildet. Demnach werden in 50% der Fälle A mit A, in anderen 50% A mit a zusammenkommen. Die Hälfte der Pflanzen sind wieder Bastarde, die andere Hälfte artreine Mutterpflanzen.
Geschlechtsbestimmung[240]. Es hat sich nun gezeigt, daß die Vererbung des Geschlechtes bei diözischen Pflanzen, von der S. 275 schon die Rede war, nach der MENDELschen Regel, genauer nach dem eben erörterten Schema der Rückkreuzung erfolgt. In Versuchen von CORRENS wurde die monözische Bryonia alba mit der diözischen Bryonia dioeca gekreuzt. Bryonia dioeca-Weibchen mit dem Pollen von Bryonia alba belegt, ergaben ausschließlich Weibchen; dagegen ergab die Kreuzung alba × dioeca 50% Männchen und 50% Weibchen. CORRENS deutet dieses Resultat so: es bestehen bei diözischen Pflanzen zwei Sippen, die nur durch Kreuzung sich erhalten können. Bei der Kreuzung dominiert das Merkmal männlich; weiblich ist rezessiv. Die Weibchen müssen im Geschlechtsfaktor homozygotisch sein (aa), die Männchen heterozygotisch (Aa). Es müssen sich in der Hälfte der Fälle die Faktoren aa kombinieren und das gibt Weibchen; in der anderen Hälfte aber A und a, und das gibt, weil A dominiert, Männchen. Bei den Versuchen mit Bryonia kommt zu dem geschlechtsbestimmenden Faktor A noch ein zweiter hinzu, den wir Z nennen und der aus einer monözischen eine diözische Pflanze macht. Die Erbformeln sind also:
Bryonia alba zzaa Geschlechtszellen za
„ dioeca Männchen ZZAa „ ZA und Za
„ „ Weibchen ZZaa „ Za.
Die beiden reziproken Kreuzungen lauten dann so:
dioeca + alba = Za + za = Zzaa; alle weiblich
alba + dioeca = za + ZA = ZzAa; 50% männlich
za + Za = Zzaa; 50% weiblich.
Die Annahme, daß die weibliche Pflanze homozygot mit der Erbformel aa, die männliche heterozygot mit der Erbformel Aa ist, macht auch verständlich, warum in der Natur die Männchen annähernd in gleicher Menge vorzukommen pflegen wie die Weibchen. Da man ferner im allgemeinen nicht in der Lage ist, einen Einfluß auf die Paarung der Gameten auszuüben, so kann man das Verhältnis der beiden Geschlechter nicht ändern. In einigen Fällen ist das CORRENS aber doch geglückt, z. B. bei Melandrium. Wird hier die Narbe mit wenig Pollen bestäubt, so erhält man 43% Pflanzen, wird aber viel Pollen aufgetragen, so treten nur 30% auf. CORRENS erklärt dieses Resultat so: Die Pollenkörner mit der Anlage a, die also Weibchen geben, sind raschwüchsiger. Bei Aufbringen von viel Pollen findet eine Konkurrenz zwischen Eizellen und Pollenschläuchen statt, und die raschwüchsigen Schläuche haben mehr Wahrscheinlichkeit, zur Paarung zu kommen, als die langsam wachsenden. Auch in anderen Eigenschaften, wie z. B. Resistenz gegen Alkohol und gegen Austrocknung, unterscheiden sich die zweierlei Pollenkörner.
Gültigkeit der Mendelschen Regeln. — Diese Regeln sind nun nicht nur auf die Bastarde im gewöhnlichen Sinne des Wortes beschränkt, sondern sie beherrschen die Vererbung im Tierreich und Pflanzenreich weitgehend. Daß es keine Vererbung gäbe, die anderen Gesetzen unterliegt, kann man zur Zeit gewiß nicht sagen, denn es sind tatsächlich auch schon gut untersuchte Fälle bekannt, die sich nicht nach den Mendelschen Regeln richten[241]. Wohl aber kann man betonen, daß schon viele Erscheinungen, die anfangs den Mendelschen Regeln zu widersprechen schienen, bei näherer Betrachtung sich ihnen völlig unterordneten.
Auch manche auf den ersten Blick schwer verständliche Tatsache wird durch die Mendelschen Regeln erklärt. So hat man z. B. beobachtet, daß der Bastard zwischen einem weißblühenden und einem hellgelbblühenden Löwenmäulchen nicht etwa eine sehr hellgelbe Blüte, sondern eine rote Blüte besitzt. In der zweiten Generation treten Spaltungen ein; es entstehen auf 3 rote 6 blaßrote, 3 hellgelbe und 4 weiße Pflanzen. Wir können die Erklärung dieses Falles hier nicht bringen und benützen ihn nur, um darauf hinzuweisen, daß die rote Farbe zweifellos die Farbe der Stammform ist, von der sowohl die weißen wie die hellgelben Formen abstammen. Bei der Bastardierung können also Ahnenmerkmale (Atavismen) auftreten. Und das trifft nicht nur in diesem Beispiel zu, sondern ist eine häufige Erfahrung der Züchter.
Die Chromosomen als Träger der Gene[242]. Die Hypothese, daß die Chromosomen die Träger der Gene sind, nimmt mehr und mehr an Wahrscheinlichkeit zu. Bei der Befruchtung bringt die Eizelle genau ebenso viele Chromosomen mit, wie die männliche Zelle, und der diploide Organismus baut also seine Zellkerne aus väterlichen und mütterlichen Chromosomen in gleicher Zahl auf. Bei der Ausbildung neuer Sexualzellen aber erfolgt die Reduktionsteilung, bei der nach den Gesetzen des Zufalls die väterlichen und die mütterlichen Chromosomen auf die Tochterzellen verteilt werden. So wird die wichtige Tatsache, daß die Geschlechtszellen immer rein sind, nie Bastardnatur haben, in der einfachsten Weise erklärt. Im Bastard ist keine Vermischung der Gene eingetreten, sie blieben nebeneinander liegen; in den Geschlechtszellen werden sie wieder getrennt. Wenn wirklich die Chromosomen die Gene tragen, dann kann es in einem Organismus nur so viele unabhängig spaltende Gene geben, als Chromosomen vorhanden sind. Indes ist die Zahl der Chromosomen viel zu gering, als daß man annehmen könnte, jedes trage nur ein einziges Gen. Alle Gene aber, die in einem Chromosom vereinigt sind, spalten für gewöhnlich nicht, sie sind aneinander gekoppelt. In der Tat kennt man Faktoren genug, die in der Regel miteinander gekoppelt bleiben, und für ein tierisches Objekt, die Fliege Drosophila, ist durch MORGAN und seine Schule bis ins einzelne hinein festgestellt, daß wirklich nur so viele unabhängig spaltende Gruppen von Genen existieren, als Chromosomen vorhanden sind.
Variabilität[243]. Unter Variabilität versteht man die Tatsache, daß die Individuen, die zu einer Spezies gehören, nicht alle gleich sind. Vielfach ist die Variabilität überhaupt nur eine scheinbare, weil man die Spezies nicht eng genug begrenzt hat. So existieren bei Rosen, Brombeeren, Draba verna usw. viele einander nahestehende Arten nebeneinander. Der Eindruck, daß hier eine „variierende“ Art vorliege, ist völlig falsch; jede der „elementaren Arten“, aus denen sich die „Sammelart“ zusammensetzt, erweist sich als konstant, macht keine Übergänge zu den anderen elementaren Arten.
Von solchen Fällen ist hier natürlich ganz abzusehen. Wir halten uns ausschließlich an möglichst eng begrenzte Arten, wenn möglich an die Nachkommenschaft einer sich selbst bestäubenden Pflanze, eine sog. reine Linie (JOHANNSEN). Und da zeigt sich, daß auch sie variiert. Wir können den Vorgang der Veränderung, die Variationen, auf zwei Ursachen zurückführen und demnach auch mit zweierlei Namen benennen: Modifikationen und Mutationen. Dazu kommen bei Kreuzung noch die Kombinationen.
Modifikationen. Darunter versteht man Variationen, die durch äußere Faktoren erzeugt sind. Es ist (S. 250 ff.) darauf hingewiesen worden, daß zahllose Außenfaktoren die Gestalt der Pflanze weitgehend beeinflussen. Groß sind z. B. die Unterschiede, die zwischen der Landform und der Wasserform einer amphibischen Pflanze oder der Ebenenform und der alpinen Form einer Art bestehen. Die in Fig. 261 (S. 253) abgebildeten Pflanzen sind Teile, eines und desselben Individuums, 1 wurde in der Ebene, 2 im Hochgebirge erzogen. Um die ganze Modifikationsfähigkeit einer Pflanze kennen zu lernen, muß man sie unter allen Kulturmethoden erziehen, unter denen sie überhaupt existieren kann; solche Versuche hat namentlich KLEBS in größerem Maßstabe mit Erfolg ausgeführt. Wenn es möglich wäre, zwei Pflanzen gleicher Abstammung unter ganz identischen äußeren Umständen zu erziehen, so müßten diese ununterscheidbar sein. Tatsächlich gelingt das nie, und dementsprechend weisen die homozygotischen Individuen einer reinen Linie auch bei möglichst gleichartiger Kultur doch zahlreiche quantitative Unterschiede auf. Betrachten wir z. B. die Samen einer reinen Linie von Bohnen, so können wir diese nach dem Gewicht in verschiedene Kategorien bringen und feststellen, wie viele Exemplare zu jeder Kategorie gehören. Das Resultat einer solchen Untersuchung gibt die Kurve Fig. 272. Es zeigt sich, daß diejenigen Gewichtskategorien am häufigsten vertreten sind, die dem Durchschnittsgewicht am nächsten stehen, und daß, je weiter eine Kategorie vom Durchschnitt entfernt ist, desto weniger Individuen zu ihr gehören. Das gleiche Resultat haben fast alle statistischen Aufnahmen von Variationen ergeben. Die Variationskurven, die man erhalten hat, stimmen immer mehr oder minder genau mit der sog. Zufallskurve überein. Das erscheint begreiflich; denn es sind stets mehrere äußere Faktoren tätig, die entweder eine Vergrößerung oder Verkleinerung der Größe, der Zahl oder des Gewichts bewirken können. Nur der Zufall entscheidet, welche Einwirkung stattfindet. Dann werden sehr selten alle Faktoren auf Verkleinerung, ebenfalls sehr selten alle Faktoren auf Vergrößerung hinwirken, und am häufigsten werden Kombinationen eintreten müssen, die ein mittleres Maß bewirken.
Sät man einen Samen einer reinen Linie aus, so ist es gleichgültig, ob man von einem kleinen, mittleren oder großen ausgeht. Die Variationskurve der nächsten Generation sieht nicht anders aus als die, von der man ausging. Auch die durch Kultur im Hochgebirge erzielten Veränderungen (Fig. 262) sind nicht erblich. Somit sind diese Modifikationen durchaus keine erblichen Veränderungen; sie dauern nur so lange oder wenig länger, als ihre Ursachen wirken.
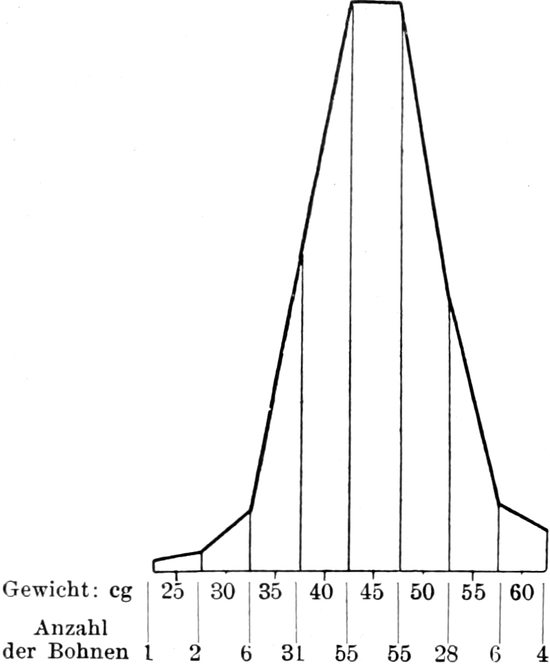
Fig. 272. Variationskurve der Gewichte der Samen einer reinen Linie von Bohnen. (Johannsens Linie K.). Nach BAUR.
Die Erfahrungen der Praxis scheinen diesem Resultat zu widersprechen. Bei dem sog. Selektionsverfahren greift man eine Pflanze mit besonderen Eigenschaften aus einer großen Menge heraus und sieht vielfach in ihren Nachkommen die gleichen Eigenschaften wieder auftreten. Das liegt daran, daß man in diesem Fall aus einem Gemisch von verschiedenen Rassen oder Linien eine einzelne isoliert hat, die ihre charakteristischen Eigenschaften auf ihre Nachkommen überträgt. Bei wirklich reinem Ausgangsmaterial hat die Selektion keinen Erfolg.
Kombinationen. Reine Linien können sich nur bei Selbstbestäubung oder vegetativer Vermehrung erhalten. Tritt dagegen Fremdbestäubung zwischen den einzelnen Linien einer Art ein, so werden homozygotische Individuen selten, Heterozygoten die Regel sein. Diese werden die Eigenschaften teils nur des einen, teils des anderen, teils auch beider Eltern besitzen; sie werden also verschieden aussehen. Diese Form von Variation ist äußerlich oft von der Modifikation nicht zu unterscheiden, denn auch sie kann in Form der Zufallskurve auftreten; innerlich aber unterscheidet sie sich sehr wesentlich von ihr, denn sie ist erblich. Die Nachkommen variieren nach den MENDELschen Regeln. Diese Form der Variation wird Kombination genannt.
Unter Mutationen[244] endlich versteht man Variationen, die sich von den Kombinationen dadurch unterscheiden, daß sie keinesfalls durch Bastardierung entstehen, die ihnen aber darin gleichen, daß sie erblich sind. Mit Sicherheit können Mutationen nur im Experiment erkannt werden, wenn in den Nachkommen einer reinen Linie Individuen auftreten, die eine neue Eigenschaft besitzen oder eine Eigenschaft des Mutterorganismus nicht besitzen, und wenn ihre Nachkommen die Abweichung beibehalten. In der Tat hat man im Experiment das Auftreten solcher Mutationen sehr häufig beobachtet. BAUR fand z. B. bei seinen Antirrhinumkulturen im Durchschnitt 2‰ mutierte Sämlinge. Aber auch für viele in der Natur gefundene Variationen ist die Wahrscheinlichkeit groß, daß sie als Mutationen betrachtet werden dürfen. So z. B. das Chelidonium laciniatum, eine Mutation von Chelidonium majus mit gezackten Blättern, die zuerst 1590 in Heidelberg gefunden wurde (Fig. 273); Fragaria monophylla, eine zuerst im Jahre 1761 beobachtete Erdbeere, die sich durch einfache Blätter von der Stammform mit dreizähligen Blättern unterscheidet. Auch die merkwürdige kronblattlose Nicotiana tabacum virginica apetala, die während der Versuche von KLEBS auftrat, gehört hierher. Viele solcher Mutationen sind nicht einmal, sondern mehrfach aufgetreten. Das gleiche hat man bei den in Kulturen entstehenden Mutanten beobachtet. Alle diese Formen unterscheiden sich von den Mutterformen nur in einem einzigen Merkmal. Und in weitaus den meisten Fällen verhält sich dieses Merkmal bei der Kreuzung mit der Stammform rezessiv; doch fehlt es nicht an Mutationen, die sich als dominant erwiesen haben. Bei Selbstbestäubung bleiben die Mutanten unbegrenzt konstant.
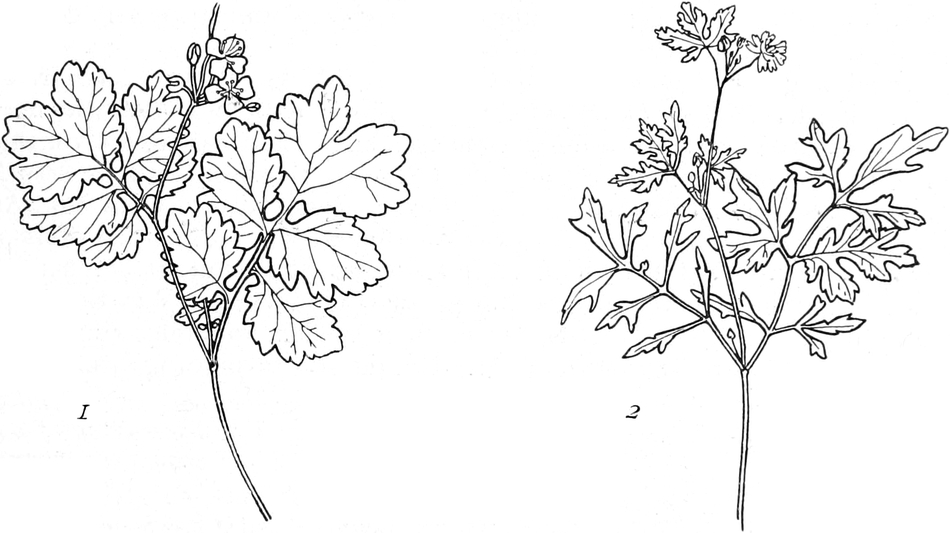
Fig. 273. Habitus von Chelidonium majus (1) und von Chelidonium majus laciniatum (2). Nach LEHMANN.
Zahlreiche „Spielarten“ unserer Gärten beruhen auf derartigen Mutationen in einem Merkmal. Dahin gehören nicht nur die schon genannten geschlitztblättrigen Formen, sondern auch die Rassen mit Trauerwuchs, Pyramidenwuchs, die schmalblättrigen, krausblättrigen und rotblättrigen Abarten. Sie treten vor allem an Sämlingen auf, in manchen Fällen aber auch rein vegetativ an Seitenzweigen (vegetative Mutation). Verständlich ist, daß sie gewöhnlich heterozygotisch sind; homozygotisch können sie ja bei geschlechtlicher Entstehung nur dann sein, wenn beide zur Verschmelzung kommende Sexualzellen gleichartig mutiert hatten, und das ist offenbar ein seltener Zufall. In den genannten Antirrhinumkulturen BAURs kamen auf 1000 Sämlinge nur 0,05 homozygotische Mutanten.
Außer den besprochenen hat man auch andere Mutationen gefunden, die sich zum Teil weitgehend von diesen unterscheiden. Hier sei nur erwähnt, daß manchmal ein Mutant sich durch eine veränderte Anzahl von Chromosomen, z. B. durch Verdoppelung derselben, von der Mutterart unterscheidet, was sich dann äußerlich in der Größe der Pflanze geltend macht. Eine besondere Kategorie von Mutation findet sich bei Oenothera Lamarckiana[245] und einigen anderen Arten dieser Gattung. Historisch sind sie von besonderem Interesse, weil hier durch DE VRIES zum erstenmal exakt die Entstehung der neuen Formen beobachtet wurde. Aber echte Mutationen können wir heute diese Varianten schwerlich mehr nennen, da Oenothera Lamarckiana offenbar ein Bastard mit der besonderen Eigentümlichkeit ist, daß seine Eltern nicht mehr existenzfähig sind. Endlich wären noch die Mutationen der Bakterien zu nennen. Diese vermehren sich ja nur durch Zweiteilung; die Mutationen sind also vegetative, und sie treten hier nach Behandlung mit Giften auf, während wir bei den Mutationen höherer Pflanzen die Ursachen gar nicht kennen. Sollten sie in einzelnen Fällen auch hier durch äußere Faktoren bedingt sein, so wären sie deshalb doch scharf von den Modifikationen zu unterscheiden; denn bei Mutationen tritt eine Veränderung in den Anlagen auf, bei den Modifikationen nicht.
Artbildung. Eine Reihe von Gründen, auf die schon S. 176 ff. hingewiesen wurde, hat zu der Vorstellung geführt, daß die Organismen, die heute unsere Erde bewohnen, sich aus anderen entwickelt haben, die vor ihnen lebten. Diese Vorstellung, die unter dem Namen Deszendenztheorie[246] bekannt ist und eine große Wichtigkeit besitzt, nimmt also an, daß die „Art“ nichts Konstantes, sondern etwas Veränderliches sei. Unter Hinweis auf das früher Gesagte (S. 176 ff.) haben wir an dieser Stelle nur zu betonen, daß von den bisher beobachteten Variationen ausschließlich die Mutationen und Kombinationen eine Rolle bei der Artbildung spielen konnten. In neuester Zeit mehren sich die Anzeichen dafür, daß die Bastardierung bei der Artbildung wichtig ist.
Dritter Abschnitt. Bewegungen.
Nicht minder allgemein wie Stoffwechsel und Entwicklung treten uns Bewegungserscheinungen an der lebenden Pflanze entgegen. Der Stoffwechsel ist mit einer fortgesetzten Bewegung der aufgenommenen rohen Nahrung sowie der Stoffwechselprodukte verknüpft. Diese Bewegungen sind zwar nicht direkt wahrzunehmen, aber darum nicht weniger sicher festgestellt; von ihnen war im ersten Abschnitt der Physiologie genügend die Rede. Daneben existiert eine Fülle von auch äußerlich sichtbaren, oft freilich nur langsam verlaufenden, manchmal aber auch ganz plötzlich eintretenden Ortsveränderungen, die entweder von der ganzen Pflanze oder von ihren einzelnen Organen ausgeführt werden.
Das Protoplasma selbst ist zu verschiedenen Bewegungsformen befähigt, sowohl im nackten Zustand (ohne Zellmembran) als auch eingeschlossen in einer Membran. Nackte Plasmakörper zeigen fast stets Bewegungen, aber auch behäutete Zellen besitzen das Vermögen der freien Ortsveränderung oft in hohem Grade. Vielzellige höhere und niedere Pflanzen befestigen sich jedoch meist am Orte ihrer Keimung durch Wurzeln und andere Haftorgane und verzichten damit ein für allemal auf einen Ortswechsel. Statt dessen haben sie aber sehr allgemein das Vermögen, die Lage und Richtung ihrer Organe durch Krümmung zu verändern. Dabei bedienen sie sich nicht nur ungleichen Wachstums, sondern sie lassen auch andere Prozesse eingreifen, die zu einer Gestaltsänderung führen. Durch solche Krümmungen werden in der Regel ihre Teile in Stellungen gebracht, die für ihre Funktion notwendig oder vorteilhaft sind; so werden die Stengel aufwärts, die Wurzeln abwärts, die Blätter mit der Oberseite nach dem Lichte hin gerichtet: Schlingpflanzen und Ranken umfassen die tragenden Stützen, und die Stengel vieler junger Keimpflanzen werden rückwärts so umgebogen, daß sie ohne Verletzung der Endknospe das feste Erdreich durchbrechen können.
Wir haben also zu unterscheiden zwischen lokomotorischen Bewegungen einerseits, Krümmungsbewegungen andererseits.
I. Lokomotorische Bewegungen[247].
A. Mechanik der lokomotorischen Bewegungen.
Ortsveränderungen kommen vor allem durch amöboide Bewegung, Zilienbewegung oder durch Protoplasmabewegung in der behäuteten Zelle zustande.
Die amöboide Bewegung freier Protoplasten ist eine kriechende Fortbewegung auf festem Substrat, bei der der nackte Plasmakörper der Amöben und Plasmodien einzelne Fortsätze nach einer oder mehreren Seiten austreibt; diese werden entweder alsbald wieder eingezogen, oder es folgt ihnen der ganze Plasmaleib in fließender Bewegung nach. Die Bewegung erinnert äußerlich an das Fließen eines zähen Flüssigkeitstropfens auf nicht benetzter Unterlage, und man nimmt an, daß die Arbeit der Bewegung wie dort von Oberflächenspannungen geleistet werde, die das reizbare Plasma lokal verändern kann.
Durch lokale Änderung der Oberflächenspannung können auch an Tropfen lebloser Substanzen (Öltropfen in Seifenlösung; Ölseifenschaum in Wasser; Quecksilbertropfen in 20% Salpetersäure und in Wechselwirkung mit Kaliumbichromatkristallen) ähnliche amöboide Bewegungen auftreten.
Die Zilienbewegung[248] ist eine Schwimmbewegung, bei der eigenartige Bewegungsorgane in Gestalt äußerst feiner, oft bei starker Vergrößerung kaum wahrnehmbarer Fädchen in Tätigkeit treten. Diese „Geißeln“ oder „Zilien“ sind kontraktile Fortsätze des Protoplasmas und finden sich zu 1, 2, 4 oder sehr zahlreich und in verschiedener Anordnung an den beweglichen Zellen (Fig. 222 und 226). Sie durchsetzen, wenn die Zelle nicht nackt ist, die Zellhaut und treiben durch ihre komplizierten Bewegungen den Plasmaleib oft mit ansehnlicher Geschwindigkeit durch das Wasser fort. Die winzigen Schwärmer von Fuligo varians legen dabei in 1 Sekunde 1 mm, das 60fache der eigenen Länge, zurück, die von Ulva noch 0,15 mm; andere sind träger. Einer der schnellsten Bazillen, der Choleravibrio, gebraucht 22 Sekunden für die Millimeterstrecke.
Die Geißeln bewirken nicht nur eine Vorwärtsbewegung, die geradlinig oder in einer Schraubenlinie erfolgt, sondern sie versetzen gleichzeitig auch den Organismus in eine Rotation um seine Längsachse. Bei Spirillum fand METZNER 40 Umdrehungen der Geißeln und 13 Umdrehungen des Bakterienkörpers in der Sekunde. Im einzelnen ist die Tätigkeit der Geißeln eine recht verschiedene. Schon ein einfaches Schwingen einer bogig gekrümmten Geißel in einem Kegelmantel kann die Schwimmbewegung herbeiführen. In anderen Fällen aber hat die Geißel die Gestalt einer Schraube, die ähnlich wie die Schiffsschraube oder ein Propeller je nach der Drehungsrichtung eine Vorwärts- oder Rückwärtsbewegung bewirkt. Während aber bei Mechanismen die Schraube starr ist, fest an einer Achse sitzt und durch Rotation der letzteren sich betätigt, muß die fest mit dem Zelleib verbundene Geißel eines Organismus ihre Schraube während ihrer Bewegung immer neu bilden. Nach BÜTSCHLIs Ausführungen nimmt man an, daß das in der Weise geschieht, daß eine schraubig verlaufende Linie größter Kontraktion fortgesetzt den Körper der Geißel umwandert. Auf andere und kompliziertere Bewegungen der Geißeln kann hier nicht eingegangen werden.
Die Diatomeen zeigen andere Formen der Bewegung. Die Arten, die einen Spalt (Raphe) in ihrer Kieselschale führen, gleiten oder schwimmen gewöhnlich in der Richtung ihrer Längsachse hin und her und ändern ihre Bewegungsrichtung durch Schwenkungen und Oszillationen. Aus der Art, wie sie kleine Körnchen ihrer Umgebung in Bewegung setzen, hat man schon früher auf einen aus der Raphe nach außen tretenden Plasmastrom geschlossen, der nach O. MÜLLER die Ursache der Bewegung sein soll[249]. — Die Zellen der Desmidiaceen führen mit Hilfe lokaler Gallertabscheidungen ihre eigenartigen Bewegungen aus; die Oszillarien scheinen sich ähnlich zu verhalten[250].
Neben solchen Ortsveränderungen der ganzen Zelle kennt man auch Bewegungen des Protoplasmas innerhalb der Zellhaut, bei denen vor allem die Rotations- und Zirkulationsbewegung zu unterscheiden sind (vgl. S. 11).
Bei diesen Bewegungen ist die äußerste Schicht des Protoplasmas, die an die Zellwand grenzt, stets in Ruhe. Das Protoplasma stützt sich also bei seiner Strömung nicht etwa auf die Zellwand, und deshalb kann die Bewegung nicht mit der einer Amöbe verglichen werden, die in die Zelle eingeschlossen ist. Auch dauert nach Abhebung des Protoplasmas von der Wand die Strömung noch eine Zeit lang fort; demnach müssen die Änderungen in den Oberflächenspannungen zwischen Protoplasma und Zellsaft die Ursache für diese Bewegungen sein.
Die Protoplasmaströmungen sind 1772 von CORTI entdeckt worden. Gute Beispiele für ihre Demonstration sind die Haare mancher Pflanzen, die Blattzellen mancher Wasserpflanzen, die langen Zellen der Characeen und Siphoneen.
B. Die Bedingungen der Lokomotion.
Da diese Bewegungen vom Protoplasma und seinen Organen ausgehen, so ist es begreiflich, daß sie an ein gewisses Ausmaß derjenigen Faktoren gebunden sind, die wir als allgemeine Lebensbedingungen kennen gelernt haben.
Das Auftreten und die Lebhaftigkeit aller dieser Bewegungen hängt demnach vor allem von günstiger Temperatur und bei den Aërobionten auch von der Gegenwart freien Sauerstoffes ab. Fakultative Anaëroben (Nitella) können auch bei Ausschluß des Sauerstoffs die Plasmabewegung wochenlang unterhalten. Obligat anaërobe Bakterien verlieren ihre Beweglichkeit bei Sauerstoffzutritt; umgekehrt gewinnen aërobe Bakterien, die bei Sauerstoffmangel unbeweglich waren, bei erneutem Sauerstoffzutritt ihre Beweglichkeit wieder (vgl. S. 213).
Überschreitung des „Minimums“ oder „Maximums“ dieser Faktoren bedingt zunächst Bewegungslosigkeit, Starrezustände (so Kälte-, Wärmestarre usw.), die anfangs noch durch Wiederkehr günstiger Bedingungen aufgehoben werden können, bei längerer Dauer aber schließlich zum Tode führen. In manchen Fällen genügt es, daß diese allgemeinen Lebensbedingungen erfüllt sind, in anderen aber muß die Bewegung durch einen besonderen Reiz ausgelöst werden. So ist z. B. bekannt, daß die Protoplasmabewegung vielfach erst nach Verwundung auftritt oder wenigstens durch einen solchen Eingriff stark beschleunigt wird. Bei gewissen Bakterien wird erst durch das Licht oder durch eine bestimmte Konzentration des Substrats die Bewegung erweckt. Ebenso kann aber auch durch äußere Einflüsse die Beweglichkeit aufgehoben werden, während bei den nur temporär bewegungsfähigen Objekten (Schwärmsporen, Spermien) auch innere Ursachen die Bewegung sistieren.
Eine ganz besondere Rolle spielen äußere Reize aber bei den lokomotorischen Bewegungen insofern, als sie diesen eine bestimmte Richtung geben. Ohne solche richtenden Reize bewegen sich die Plasmodien ziellos; die Richtung der Schwimmbewegungen und der Zirkulationsbewegung wechselt häufig und nur die Rotationsströme sind durch eine konstante Richtung ausgezeichnet.
C. Taxien.
Als richtende Reize kommen vor allem einseitig einwirkende Beleuchtung und ungleich im Wasser verteilte, gelöste Stoffe in Betracht. Die durch solche Faktoren erzielten Richtungsbewegungen werden als Taxien bezeichnet; durch Licht bewirkte heißen Phototaxis, durch gelöste Stoffe hervorgerufene Chemotaxis. (Weitere Taxien s. S. 293.)
Richtungsbewegungen führen die freibewegliche Pflanze oder das bewegliche Organ einer Zelle entweder zum Reizmittel hin oder von ihm weg; im ersten Falle spricht man von positiver, im zweiten von negativer Taxis. Welche von diesen verschiedenen Reaktionsweisen eintritt, hängt vielfach nicht nur vom Objekt, sondern auch von äußeren Umständen ab. Man unterscheidet ferner eine topische Reaktion, bei der eine Einstellung und Bewegung in der Richtung des wirksamen Reizes stattfindet, und eine phobische Reaktion, bei der ein Übergang zu einer anderen Intensität des Reizmittels die Reizbewegung auslöst.
1. Phototaxis.
Phototaktische Bewegungen[251] kann man am besten wahrnehmen, wenn man Wasser mit Volvocineen und Chlamydomonaden oder Schwärmsporen von Algen in einem Glasgefäß der einseitigen Beleuchtung etwa in der Nähe eines Fensters aussetzt. Nach kurzer Zeit ist die gleichmäßige Grünfärbung des Wassers verschwunden, da sich die beweglichen Organismen alle an der Lichtseite des Gefäßes angesammelt haben. Dreht man das Gefäß um 180°, so eilen die Algen sofort an die nunmehr belichtete Seite. Läßt man aber stärkeres Licht, etwa direktes Sonnenlicht einfallen, so sieht man dieselben Organismen, die bisher positiv reagierten, negativ phototaktisch werden und von der Lichtquelle wegschwimmen. Auch andere äußere Faktoren können eine solche „Umstimmung“ bewirken.
Bei manchen chlorophyllfreien Organismen, so den Plasmodien der Schleimpilze, kommt es auch bei niedrigen Lichtintensitäten gewöhnlich nur zu negativer Reaktion. Es gibt aber auch farblose Organismen, die positiv phototaktisch reagieren.
Man kennt phobische und topische Reaktionen bei der Phototaxis. Manche Organismen können sowohl phobisch als topisch reagieren, andere zeigen nur eine dieser Reaktionsweisen. — Phobotaktisch reagieren vor allem gewisse Bakterien, die auf den Übergang von Licht zu Dunkelheit mit einer Rückwärtsbewegung antworten. An einer stark beleuchteten Stelle werden sie dadurch gefangen, daß sie jedesmal, wenn sie durch ihre Bewegungen ins Dunkle geführt werden, zurückprallen (Lichtfalle). — Die topotaktischen Organismen stellen vor allem ihre Längsachse in die Lichtrichtung ein, um sich dann nach der Lichtquelle hin zu bewegen, wenn sie positiv reagieren, oder von ihr wegzuschwimmen, wenn sie negativ phototaktisch sind. Fallen Lichtstrahlen verschiedener Richtung gleichzeitig auf solche Organismen ein, so bewegen sie sich in der Resultierenden. Dieses „Resultantengesetz“ gilt nicht nur in Beziehung auf die Richtung, sondern auch in Beziehung auf die Intensität.
Im Experiment kann man Bedingungen herstellen (konvergentes Licht), die z. B. negativ topotaktische Schwärmer zwingen, indem sie sich von der Lichtquelle entfernen, in immer hellere Zonen zu eilen. In der Natur aber führen zweifellos die phototaktischen Bewegungen die Organismen an Orte optimaler Helligkeit.
Sehr auffallende Phototaxis besitzen die Chlorophyllkörner[252], deren Bewegungsmechanismus freilich noch ganz unbekannt ist. Diese Bewegungen bringen das Chlorophyllkorn in eine derartige Lage, daß es eine optimale Lichtmenge aufnehmen kann. Diese Lage wird bald durch Drehungen an Ort und Stelle, bald durch Wanderung an andere Stellen erreicht.