DEUXIÈME PARTIE.
Reading edition
Les Kolatiers : Étude botanique, géographique et biologique.
CHAPITRE IV.
Position systématique et divisions du genre Cola.
Le genre Cola appartient à la famille des Sterculiacées créée par Ventenat en 1804. Cette famille comprend aujourd’hui plus de 800 espèces renfermées dans une cinquantaine de genres, répartis dans les diverses régions chaudes du globe.
Deux de ces genres : le genre Theobroma (Cacaoyer) et le genre Cola sont les seuls qui contiennent des plantes ayant une grande importance économique.
Au moment où Ventenat fit des Sterculiacées une famille autonome, détachée des Malvacées parmi lesquelles Antoine-Laurent de Jussieu avait placé les deux ou trois espèces de Sterculia connues de son temps, elle était réduite à quelques espèces de ce dernier genre.
Les grands voyages d’exploration botanique dans les contrées tropicales du XIXe siècle, amenèrent la découverte de nombreux représentants de ce groupe, ce qui entraîna le morcellement de la famille.
Quand le genre Cola fut créé en 1832 par Schott et Endlicher, les quelques espèces alors connues avaient été réunies, jusqu’à cette époque dans le genre Sterculia établi par Linné en 1737. Les premières espèces décrites, qui plus tard, devaient devenir des Cola, furent le Sterculia cordifolia Cavanilles (1799) et les Sterculia nitida et S. grandiflora de Ventenat (1804) et le S. acuminata de Palisot de Beauvois (1804), ainsi que le S. heterophylla Pal. Beauv.
Le S. verticillata Thonning (in Schumacher) date seulement de 1827.
A la vérité, comme nous l’avons antérieurement établi, trois appellations génériques sont antérieures à la dénomination Cola (1832) et s’appliquent aux plantes qui font l’objet de cette étude.
La première, celle de Bichy ou Bichea, est due à Stokes[70] en 1812, la deuxième fut créée par Rafinesque, c’est celle d’Edwardia ; et la troisième, celle de Lunanea, due à A.-P. De Candolle, date de 1825.
Plusieurs botanistes, et notamment Otto Kuntze[71] et Hiern[72], ont récemment substitué au nom de Cola la deuxième de ces appellations anciennes. En vertu des règles de priorité, en usage dans la nomenclature botanique, ce n’est nullement le nom admis par ces auteurs, mais c’est évidemment le terme de Bichea qu’il faudrait adopter aux lieu et place de celui de Cola ; c’est ce qu’avait fait le savant botaniste Pierre dans ses notes manuscrites.
Si toutefois nous nous rangeons à la manière de voir de K. Schumann, en adoptant le nom de Cola pourtant moins ancien, il n’est pas douteux que le nom de Bichea s’appliquait bien au Cola et que l’appellation d’Edwardia lurida Raf. = (Lunanea Bichy P. DC. désignait également bien un vrai Kolatier (probablement C. nitida), cultivé à la Jamaïque dès le XVIIIe siècle.
D’autre part, les indications de Stokes, de Rafinesque et de A.-P. de Candolle prêtent trop à confusion. Ce dernier botaniste en particulier, connaissait en effet si mal la plante en question qu’il la décrivit à la fin de la famille des Anacardiacées, alors qu’il avait décrit les Sterculia et en particulier le S. acuminata à leur véritable place, c’est-à-dire dans la famille des Sterculiacées.
Aug. Chevalier et Em. Perrot. — Les Kolatiers. 48 bis.
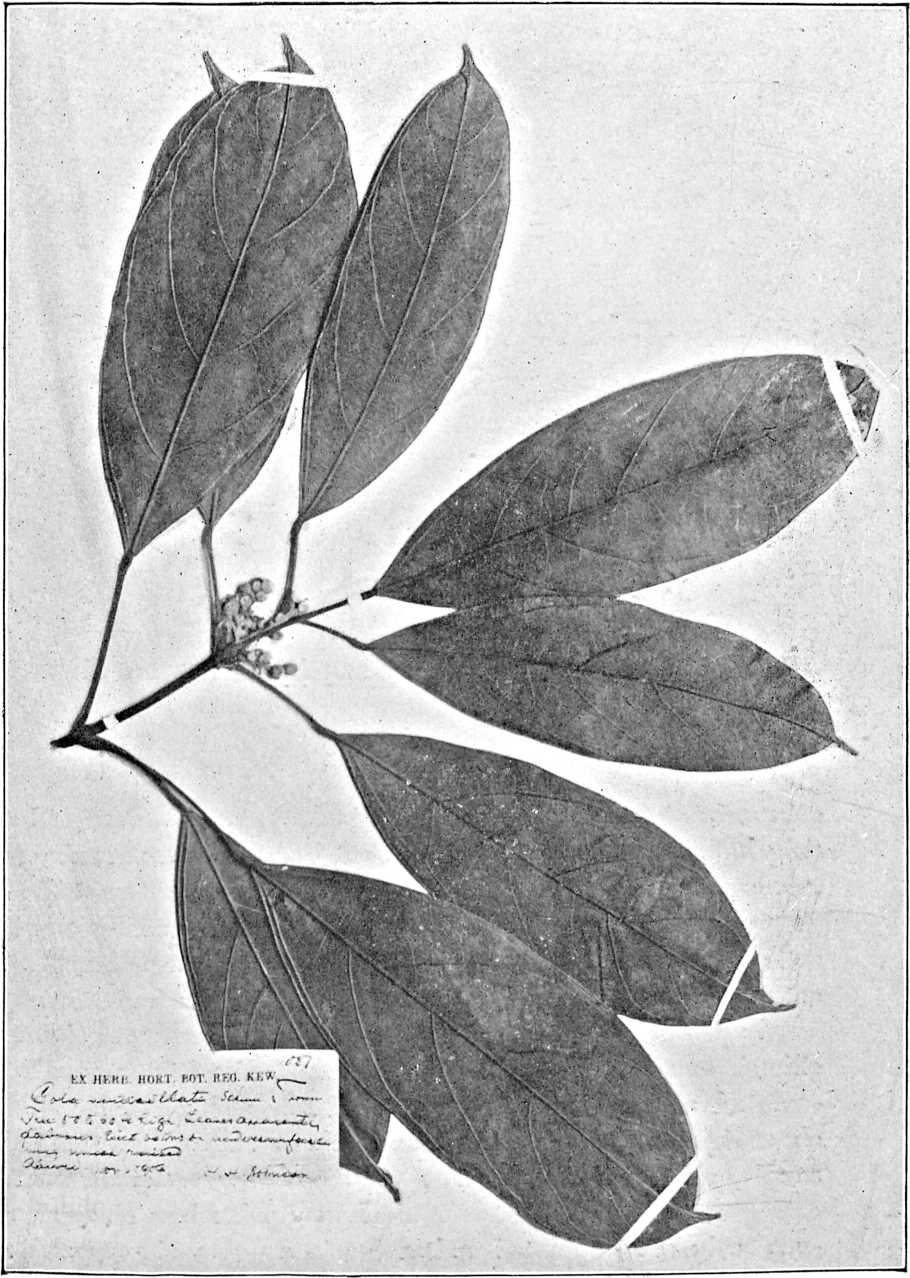
Fig. 3. — Cola verticillata Stapf. — Rameau en fleurs. — Gold-Coast (Herb. Kew)
Mais la substitution d’une des dénominations Bichea, Edwardia ou Lunanea à celles de Cola amènerait un changement trop profond dans la nomenclature, changement qui risquerait de n’être pas accepté par la majorité des botanistes. Nous conserverons donc ce dernier nom qui a reçu la consécration de l’usage.
C’est d’ailleurs la conclusion à laquelle est arrivée la Commission internationale de nomenclature au Congrès botanique de Vienne en 1905, aussi le nom de Cola figure dans la colonne de l’Index nominum genericorum utique conservandorum secundum articulum visesimum regularum nomenclaturæ botanicæ internationalium.
* * *
Endlicher et Schott, puis Rob. Brown n’admettent encore que trois espèces du genre Cola ; Masters, dans le tome I du Flora of tropical Africa, paru en 1868, en cite déjà 11, tandis que Baillon, en 1873, n’en mentionne que 6 dans son Histoire des Plantes.
K. Schumann, en 1900, dans sa Monographie des Sterculiacées africaines, après avoir étudié les matériaux rapportés à l’Herbier de Berlin par les explorateurs du dernier quart du XIXe siècle, fut amené à étendre considérablement le nombre des espèces connues. Il en porte le total à 32 et si l’on y joint les espèces décrites depuis cette époque par De Wildeman, W. Busse, A. Engler et par l’un de nous, ce chiffre s’élève aujourd’hui à 40 espèces environ. Ajoutons enfin que l’intérieur du continent africain est encore trop mal exploré pour qu’on puisse nier la possibilité de découvrir encore de nombreuses espèces nouvelles, dépourvues probablement, il est vrai, d’un réel intérêt économique, car il est peu probable qu’on découvre encore de nouveaux Kolatiers produisant des amandes très appréciées par les indigènes.
K. Schumann eut le grand mérite, non seulement de décrire beaucoup d’espèces nouvelles du genre Cola, mais il les groupa encore méthodiquement en sections en s’appuyant sur des caractères importants qu’il fut le premier à mettre en relief.
La séparation des Sterculia et des Cola est aujourd’hui admise par tous les botanistes.
Dans le dernier genre, spécial à l’Afrique occidentale et centrale, les fleurs mâles ont les loges des anthères régulièrement disposées sur un ou deux rangs et forment une couronne simple ou double ; de plus, la graine adulte est privée d’albumen.
Dans les Sterculia, répandus dans tous les pays tropicaux, les fleurs mâles ont les loges des anthères rapprochées irrégulièrement et réunies le plus souvent en boutons ; les graines présentent toujours un albumen.
« On peut facilement, dit K. Schumann, séparer le genre Cola ainsi défini en deux groupes. Le premier comprendra les espèces dont les anthères longues et linéaires sont rangées en anneau simple ; le second renfermera les espèces avec loges des anthères ellipsoïdales superposées, c’est-à-dire réunies en deux groupes annulaires, situés l’un au-dessus de l’autre. Dans ce dernier, les botanistes systématiciens disent antheris maximi divaricatis ; il serait préférable de dire antheris superpositis. »
Le même auteur partage ensuite le premier groupe en quatre sections ou sous-genres :
La première, comprenant seulement le Cola caricifolia (G. Don) K. Schum., se différencie facilement par une duplicature des carpelles en relation avec le nombre des dents du calice ; il y a 8 à 10 feuilles carpellaires pour un calice à 4 ou 5 lobes. Le savant botaniste de Berlin voit dans ce caractère un peu anormal, un stade ancestral, d’où le nom de Protocola qu’il donne à cette section.
La deuxième, qui ne comprend également qu’un seul représentant (C. Chlamydantha K. Schum.), a aussi un gynécée pléiomère (à feuilles carpellaires doubles des divisions du calice), mais elle diffère de la section Protocola par le nombre considérable de loges d’anthères qui s’élève à 30 au minimum. Dans le genre Cola comme dans la plupart des Sterculiacées, les anthères sont à deux loges (l’anthère est à trois loges seulement chez le Ayenia) et dès lors le C. chlamydantha aurait donc 15 étamines. L’auteur adopte pour cette section le nom de Chlamydocola, pour rappeler que la fleur est enveloppée d’un grand involucre à 3 folioles.
Ces deux sous-genres diffèrent encore par les feuilles, lobées chez Protocola et digitées chez Chlamydocola.
Viennent ensuite deux autres sous-genres qui, avec les précédents, constituent le premier groupe principal ; ils possèdent seulement 3 à 5 carpelles : la section Haplocola est pourvue de feuilles simples, entières ou lobées ; celles des espèces de la section Cheirocola sont au contraire digitées.
« Ce dernier sous-genre subira peut-être, par suite d’études plus approfondies, un nouveau démembrement : les grosses graines du C. pachycarpa K. Schum. entourées d’un tégument épais et charnu sont bien particulières et, d’autre part, le C. digitata Mast., avec ses petites graines renfermées dans des carpelles déhiscentes de bonne heure et portées sur un long stipe, est aussi très spécial. ».
Le deuxième groupe principal, remarquable par la double rangée de loges staminales, comprend les deux sections ou sous-genres Autocola et Anomocola.
Dans le premier se rangent les espèces fournissant les vraies noix de Kola, d’où sa dénomination. Le sous-genre Anomocola en différerait par les feuilles verticillées ; en outre, les feuilles accompagnant les fleurs (préfeuilles ou bractées recouvrantes) sont groupées en un organe en forme de bonnet se détachant par une fente annulaire basale, caractère qui ne se rencontre chez aucun des autres représentants de la famille des Sterculiacées. Une seule espèce y est actuellement rangée, le C. anomala K. Schum. Bien que nous n’ayons pas vu le type, nous pensons que cette espèce n’est autre que le Cola verticillata et ce dernier présente des analogies trop grandes avec les autres espèces de la section Autocola pour que nous l’en séparions.
Les caractères de ces 5 sections ont été résumés par K. Schumann dans un tableau dont voici la traduction :
A. Androcée sur un seul rang, c’est-à-dire avec loges des anthères étroites, parallèles et placées à côté les unes des autres en formant une seule couronne qui entoure un rudiment de pistil.
A. Carpelles en nombre double des dents du calice.
α Etamines en même nombre que les carpelles. Feuilles simples, lobées
1. Protocola.
β Etamines (15) plus nombreuses que les carpelles. Feuilles digitées
2. Chlamydocola
B. Seulement de 2 à 5 carpelles.
α Feuilles entières ou lisses
3. Haplocola.
β Feuilles digitées
4. Cheirocola.
B. Androcée sur deux rangs, c’est-à-dire que les loges des anthères, relativement courtes, sont placées l’une au-dessus de l’autre sur deux rangs (antheræ maximi divaricantes vel superpositæ).
A. Feuilles parfois verticillées sur les jeunes rameaux, mais plus tard toujours disposées en spirales. Bractées de l’inflorescence petites, ouvertes ; de petites préfeuilles
5. Autocola.
B. Feuilles également disposées en verticilles sur les axes florifères ; bractées relativement grandes réunies entre elles et formant une sorte de bonnet se détachant par une fente annulaire
6. Anomocola.
L’étude de toutes les espèces ainsi réparties nous entraînerait hors du sujet que nous avons choisi. Nous nous contenterons d’examiner en détail les espèces qui constituent la section Autocola qui, dans le travail de K. Schumann, sont au nombre de 5 caractérisées comme il suit :
AUTOCOLA K. Schum.
A. Feuilles lancéolées ou oblongues, cunéiformes ou arrondies à la base, jamais lobées, plus ou moins distinctement trinerviées.
A. Feuilles sèches de couleur cuir clair, paucinerviées, calice glabre (nu) à l’intérieur ; seulement 6 graines par carpelle ; embryon avec deux cotylédons qui restent fermés pendant la germination
Cola vera K. Schum.
B. Feuilles sèches la plupart brun sombre, plurinerviées. Calice velu à l’intérieur ; 10 à 12 semences par carpelle ; embryon avec 4-6 cotylédons qui s’écartent à la germination
C. acuminata (Pal. Beauv.) R. Br
B. Feuilles entières, ovales arrondies, jusqu’à former un cercle, largement aigües à la base ou rétrécies ou arrondies, plurinerviées, jamais profondément cordiformes.
A. Feuilles glabres ; inflorescences très ramifiées, lâches. Fleurs ayant au plus 14 loges d’anthères
C. lateritia K. Schum.
B. Feuilles pourvues en-dessous de belles écailles dorées, à rameaux longs portant de nombreuses fleurs
C. hypochrysea K. Schum.
C. Feuilles ovales, d’ordinaire lobées, profondément cordées à la base
C. cordifolia (Cav.) R. Br.
Tel était l’état de la question à l’époque de la publication de la remarquable monographie de K. Schumann. Nous n’avons reproduit ce tableau qu’à titre documentaire, car nous montrerons plus loin qu’il est tout à fait insuffisant pour différencier les diverses espèces de la section Autocola.
Le sectionnement du genre Cola, lui aussi, doit être légèrement modifié. Nous avons déjà dit que la section Anomocola devait être fondue avec la section Autocola ce qui réduisait à quatre le nombre des sections ; mais il devient nécessaire, d’après nos recherches, de scinder en deux la section Autocola, la seule dont nous ayons à nous occuper ici.
Les deux premières espèces citées dans le tableau ci-dessus constitueront la nouvelle section Eucola, qui comprendra les cinq espèces étudiées dans un prochain Chapitre. Les trois dernières espèces du tableau précédent formeront une dernière section que nous nommons Macrocola, ce nom rappelant qu’elle renferme les plus grands arbres du genre.
Sect. MACROCOLA A. Chev.
Tous les représentants connus de cette section sont de très grands arbres s’élevant parfois de 25 mètres à 40 mètres de hauteur. Feuilles alternes, grandes ; limbe à contour suborbiculaire, parfois lobé, souvent plus large que long, arrondi ou cordé à la base. Carpelles 3 ou 4 (rarement 5). Stigmates formant un écusson lobé recouvrant l’ovaire. Follicules mûrs rouges ou d’un vert-jaune marbré de pourpre, toujours déhiscents à maturité, pubescents à l’intérieur. Graines peu volumineuses, entourées d’un tégument externe épais devenant à maturité charnu-mucilagineux et très sucré. Cotylédons 2. Espèces : Cola cordifolia (Cav.) R. Br., C. cordifolia var. nivea Pierre (A. Chev.), C. cordifolia var. Maclaudi (Cornu) A. Chev., C. gigantea A. Chev., C. lateritia K. Schum., C. hypochrysea K. Schum., et d’autres espèces décrites par De Wildemann.
Sect. EUCOLA A. Chev.
Arbres de petite taille (le plus souvent de 6 à 15 mètres de hauteur, dépassant rarement 20 mètres). Feuilles alternes parfois verticillées ou subverticillées ; limbe lancéolé ou oblong, jamais plus large que long. Carpelles 5 rarement 6 à 8, stigmates oblongs réfléchis sur les ovaires. Follicules souvent indéhiscents à maturité, de couleur grisâtre, verte ou blanchâtre, lisses à l’intérieur. Graines grosses, entourées d’un tégument externe blanchâtre membraneux et consistant à maturité, non sucré. Cotylédons presque toujours plus de deux, ou deux dans la seule espèce C. nitida. Amandes comestibles, ordinairement riches en caféine.
Espèces : Cola nitida (Vent.) A. Chev. et ses races, C. acuminata (Pal. Beauv.) Schott et Endl., C. verticillata (Thonn. in Schum. Stapf.), C. Ballayi Cornu in Hort. Paris.
Espèce douteuse : C. sphærocarpa A. Chev.
Dans tous les chapitres qui suivront, nous ne nous occuperons plus désormais que des espèces de cette section.
CHAPITRE V.
Caractères généraux des espèces de la section Eucola.
Port. — Tous les Kolatiers de la section Eucola sont des arbres de deuxième grandeur atteignant leur port définitif vers la quinzième ou la vingtième année. Dans l’ensemble, ils rappellent un peu les Noyers ou mieux encore peut-être les Pommiers à cidre. Les branches s’étalent à partir d’une hauteur de 3 à 4 mètres et il est rare que le tronc atteigne 6 à 8 mètres sans ramifications (Fig. 4). La hauteur totale des Kolatiers adultes est de 15 à 20 mètres et exceptionnellement dans la forêt vierge leurs dimensions peuvent s’élever jusqu’à 25 mètres de hauteur avec un tronc mesurant jusqu’à 60 cm. de diamètre à la base.
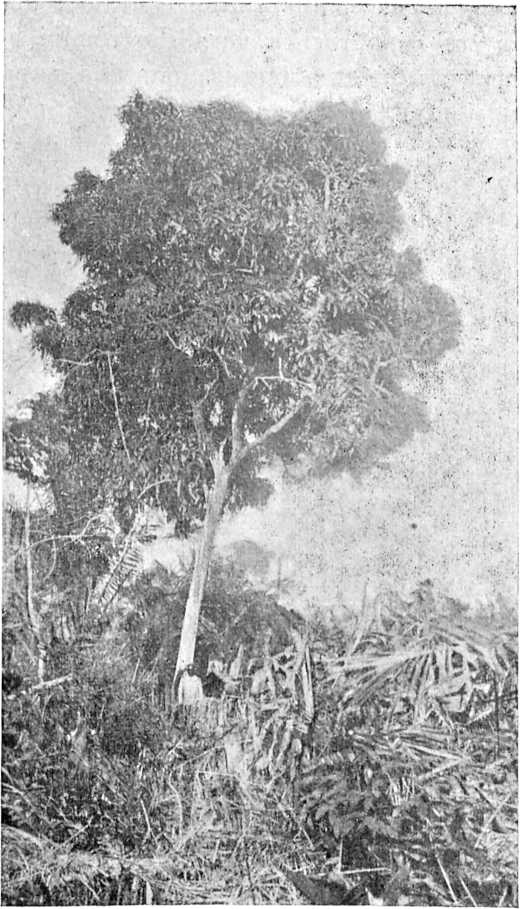
Les Kolatiers plantés dans les endroits éclairés, par exemple autour des villages, restent toujours plus petits et souvent se ramifient à moins de 2 mètres au-dessus du sol. Au contraire ceux qui croissent dans les sous-bois de la forêt ont souvent un tronc grêle et lorsque les arbres environnants sont abattus, ils se présentent avec un tronc élancé (Fig. 5).
L’écorce du tronc est brune et s’enlève par écailles ; sur les jeunes rameaux, l’épiderme persiste jusqu’à la troisième ou quatrième année ; ces mêmes rameaux sont pourvus d’une moelle abondante et à l’état frais sont cylindriques, de couleur brun-verdâtre, luisants, sans trace de lenticelles. Les cicatrices foliaires produisent des écussons sub-circulaires, très saillants, au-dessus desquels on observe souvent les gemmules dont il sera question plus loin.
A l’état sec, les rameaux les plus jeunes sont anguleux et cannelés, par suite de la course des faisceaux libéro-ligneux des feuilles qui descendent en cordons apparents à l’extérieur sur un assez long parcours dans l’écorce avant de se joindre à la couronne libéro-ligneuse de la tige.
Gemmules. — Louis Pierre, dans les notes manuscrites jointes à son Herbier, donne ce nom à des organes très particuliers qui ne paraissent pas avoir été signalés encore et qui existent chez toutes les espèces de la section Autocola (sensu stricto).
Ce sont de gros bourgeons qui naissent à l’aisselle de certaines feuilles lorsque celles-ci sont parvenues à l’état adulte. Ces bourgeons sont protégés extérieurement par un grand nombre d’écailles se recouvrant les unes les autres. L’extérieure est très brune, parcheminée, coriace ; ses bords sont soudés de sorte qu’elle affecte la forme d’un cornet abritant le bourgeon tout entier.
Les gemmules persistent après la chute des feuilles, puis au lieu de donner naissance à des rameaux ou à des inflorescences, elles se détachent parfois à leur tour en laissant au-dessus de la cicatrice foliaire une autre cicatrice circulaire, plus petite et fortement concave.
L’abondance, la forme et les dimensions de ces gemmules varient d’un arbre à l’autre. Mais on les trouve particulièrement abondantes sur certains individus végétant dans des conditions défavorables.
Il s’agit en réalité de bourgeons dormants pouvant produire des inflorescences ou pouvant tomber avant leur épanouissement pour des causes encore mal connues.
Aug. Chevalier et Em. Perrot. — Les Kolatiers. 56 bis.
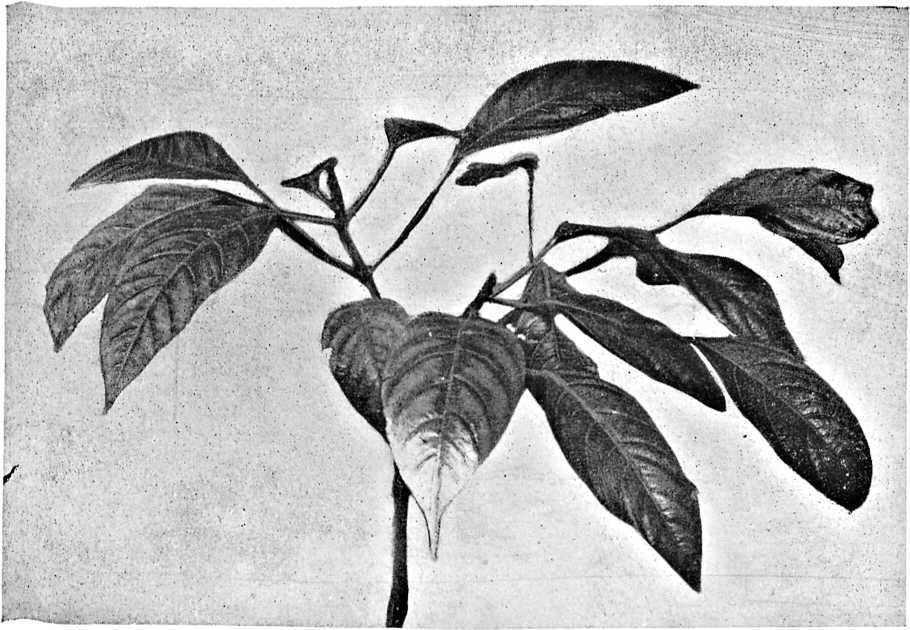
FIGURE 11.
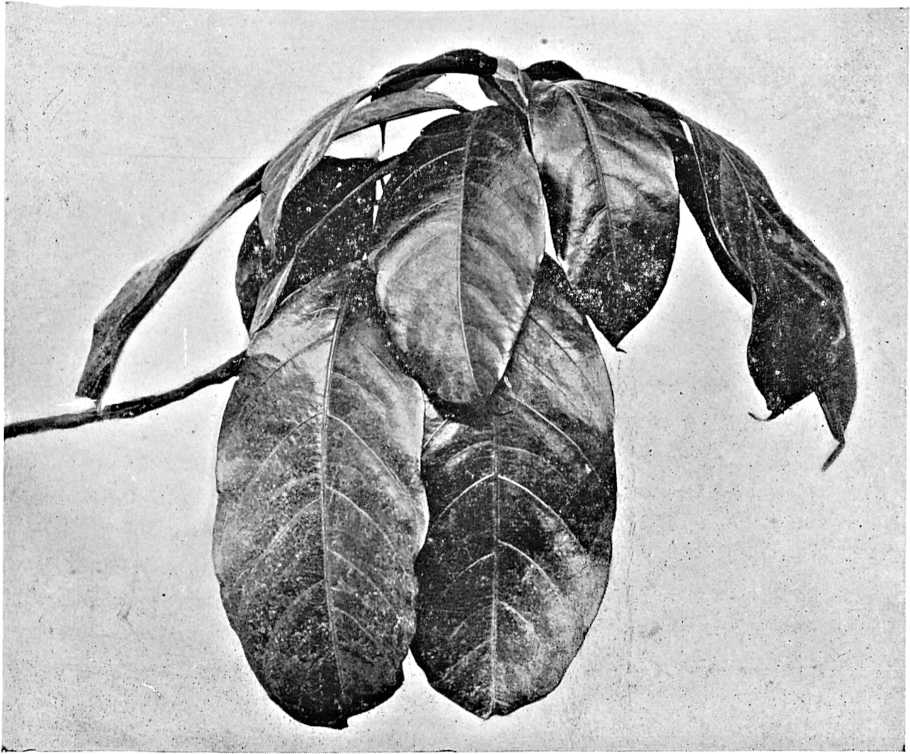
FIGURE 12.
Fig. 11. — Cola nitida A. Chev. — Jeune sujet vivant (Exemplaire du Muséum de Paris).
Fig. 12. — Cola sp. à feuilles pendantes du Congo (Exemplaire cultivé dans les serres du Muséum).
Aug. Chevalier et Em. Perrot. — Les Kolatiers. 57 bis.
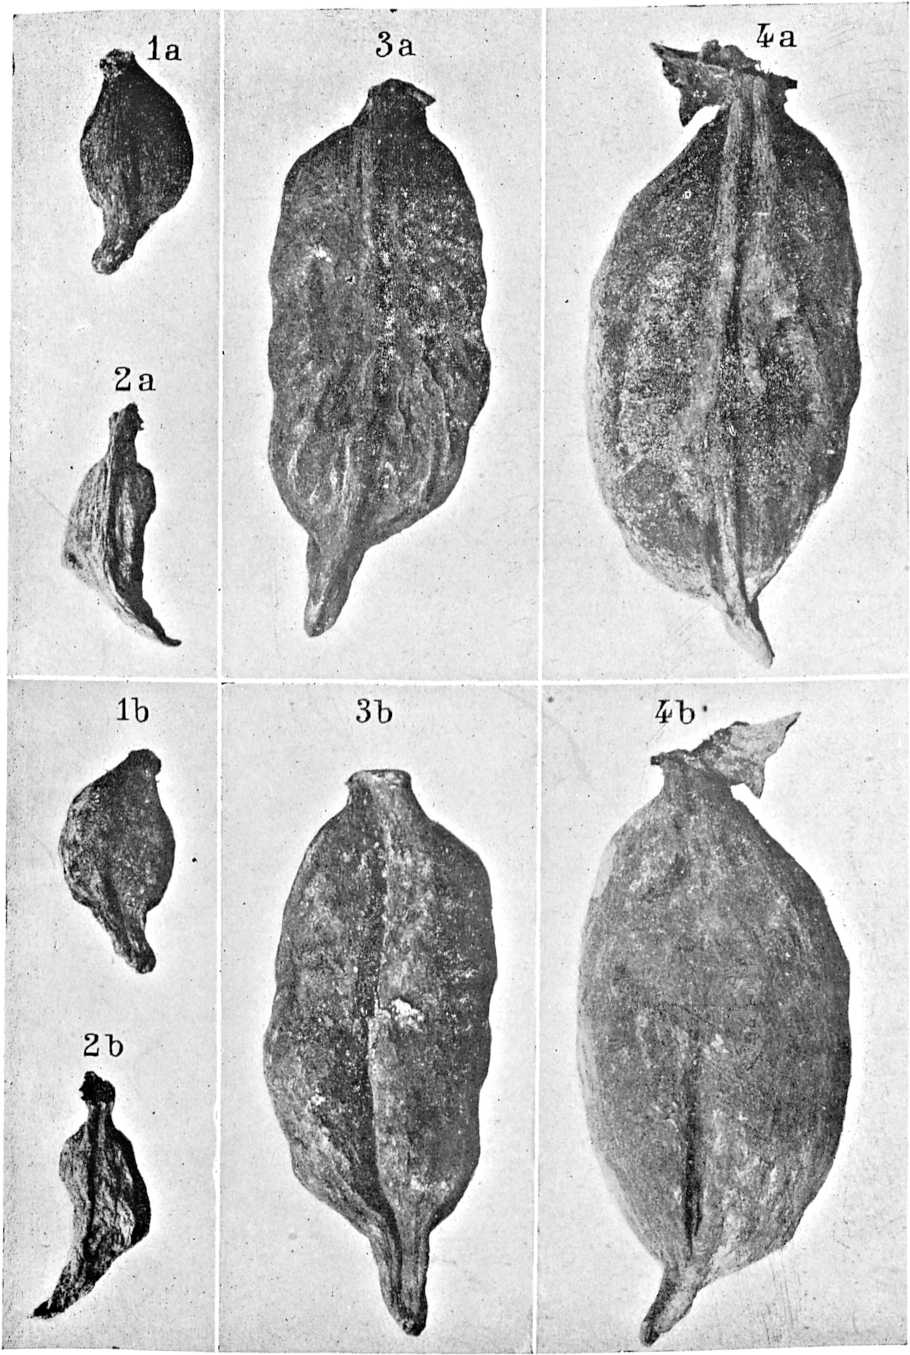
Fig. 13. — Cola acuminata Schott. et Endl. — Follécules à différents âges.
a, vues par la face supérieure ; b, vues par la face inférieure ; Gabon (Herb. Mus. Paris).
Feuilles. — Répartition. — Les feuilles sont, après les graines et les fruits, les parties les plus importantes pour distinguer les espèces de la section Eucola. Les variations, d’une espèce à l’autre, portent surtout sur leur répartition, leur forme générale, la disposition des nervures et sur l’acumen. Par contre, des différences individuelles parfois considérables s’observent souvent dans la même espèce ; elles se rapportent plus particulièrement aux dimensions du pétiole, longueur et diamètre, à l’articulation de ce dernier avec le limbe, aux dimensions et à la consistance de celui-ci, au nombre des nervures. Tous ces caractères d’ordre secondaire sont fonction de l’âge et de la vigueur des rameaux sur lesquels sont insérées les feuilles.
(Cliché Schiffer) Fig. 5. — Cola nitida dans une plantation chez les Bétés à la Côte d’Ivoire (conservé sur l’emplacement de la forêt défrichée).
Presque toujours isolées, elles sont cependant, dans le C. verticillata Stapf, nettement verticillées par 3 ou par 4 à l’extrémité des rameaux et parfois opposées à leur base (fig. 3). Chez quelques formes d’autres espèces, on observe parfois de 2 à 6 feuilles insérées presque à la même hauteur à l’extrémité de certains rameaux et dans ce cas elles sont très brièvement pétiolées. Un examen plus attentif permet de constater que ce sont des feuilles isolées en disposition spiralée, mais sur une spire à tours très rapprochés vers l’extrémité et s’écartant progressivement au fur et à mesure que l’on se rapproche de la base du rameau où leur disposition redevient normale.
Le C. Ballayi porte ses feuilles groupées par faux verticilles de 5 à 15 feuilles, formant ainsi des panaches très écartés (Pl. VIII et fig. 6) les uns des autres et donnant à cet arbre un aspect particulier. Un gros rameau privé de feuilles sur une grande partie de sa longueur se termine par 2 ou 3 de ces faux verticilles très rapprochés les uns des autres et les feuilles qui s’y insèrent sont dressées, formant ainsi un seul gros bouquet à son extrémité. Tout le reste du rameau est complètement dénudé ou parfois porte deux ou trois bouquets de feuilles en faux verticilles, espacés de 5 cm. au moins les uns des autres.
Pétiole. — Parfois presque nul pour les feuilles terminant les rameaux, il peut mesurer 15 à 20 cm. chez les feuilles inférieures et son diamètre est également très variable. Sur les rameaux grêles, le diamètre n’est guère que de 2 mm., tandis qu’elle atteint 4 mm. sur les pousses très robustes. Il est toujours presque cylindrique et présente à ses deux extrémités des renflements moteurs en forme de bourrelet épais et allongé.
Le rôle de ces renflements est de régler par turgescence l’inclinaison de la feuille, d’après l’éclairage qu’elle reçoit. Au jour et à la grande lumière, le limbe est très incliné par rapport au pétiole (Fig. 11) ; dans les parties ombragées, le limbe est disposé de manière à recevoir le maximum d’éclairage. Dans le chapitre consacré à l’anatomie, nous montrerons comment s’effectue ce mouvement.
Le pétiole forme souvent un angle de 90° avec l’axe du rameau, sauf dans le C. Ballayi où il est très ascendant. Au contraire, dans une espèce encore inédite cultivée dans les Serres du Muséum de Paris, il est pendant et les rameaux ont ainsi un port très spécial.
Fig. 8. — Cola acuminata. Feuilles anormales avec des lobations.
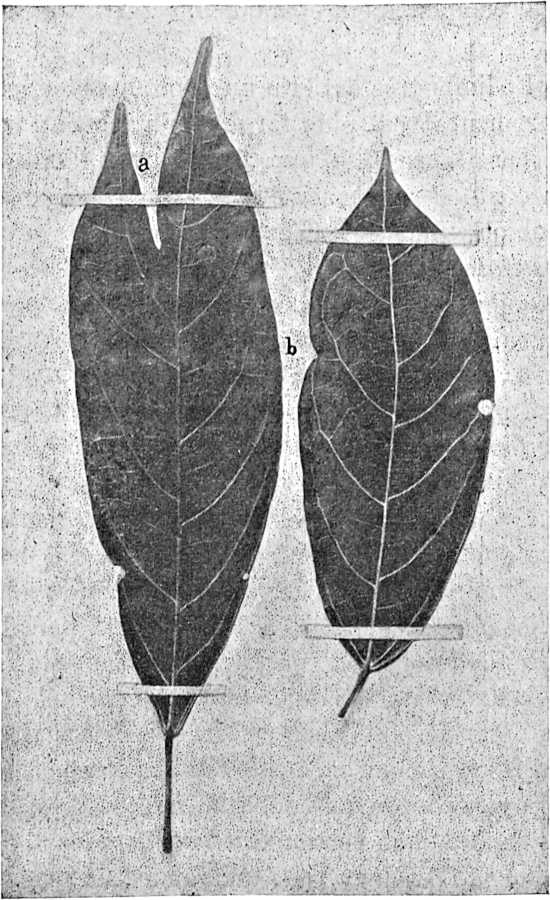
Quant au limbe, il est rare qu’il se continue dans la direction du pétiole. Le plus souvent il est pendant et forme un angle très ouvert avec ce dernier (Fig. 2) ; seules les feuilles des pousses terminales, à pétiole court, ont la nervure médiane dans son prolongement et, d’une façon générale, plus le pétiole est long, plus le limbe est incliné. Le pétiole semble donc s’allonger de manière à assurer à la feuille un éclairage suffisant. Il est accompagné à sa base dans les jeunes pousses de très petites stipules linéaires ou lancéolées tombant bien avant que les feuilles soient complètement épanouies.
Limbe. — Le limbe très entier a un contour oblong, ou oblong-lancéolé ; rarement il est plus large par rapport à la longueur et dans ce cas il présente une forme ovale-lancéolée. Très rarement le contour est assez étroit pour que le limbe soit nettement oblong-linéaire. C’est le cas pour le Cola mixta forma angustifolia A. Chev.
Presque toujours cunéiforme à la base, il est cependant parfois arrondi, ainsi qu’on le constate sur le type même du Sterculia grandiflora Ventenat (Pl. IV). Au sommet, il se termine plus ou moins brusquement par un acumen obtusiuscule mesurant de 5 mm. à 25 mm. de long, assez étroit, tantôt droit, tantôt incliné d’un côté.
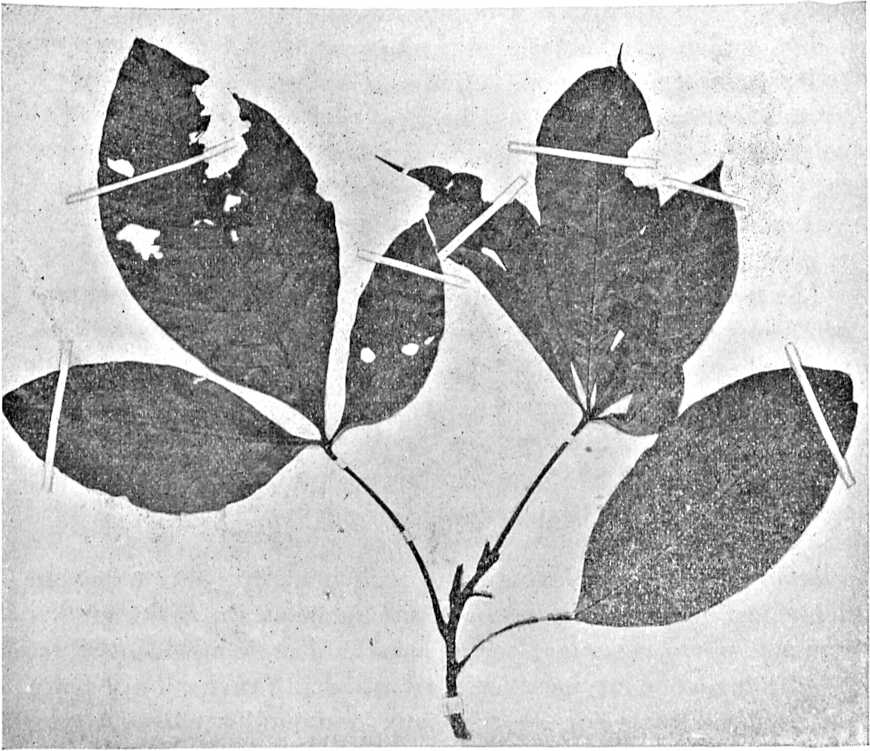
En résumé, toutes les espèces de la section Eucola ont une forme générale identique et ne présentent point les grandes variations qu’on observe dans certaines sections du même genre. Nous avons parfois trouvé sur Cola acuminata, parmi un grand nombre de feuilles normales, quelques feuilles plus ou moins lobées au sommet (Fig. 8). Cette anomalie permet d’expliquer l’existence à l’état normal, chez certaines espèces d’autres sections, de feuilles lobées ou même de feuilles composées-digitées. Enfin, nous avons découvert dans la forêt vierge de la Côte d’Ivoire, une espèce de la section Cheirocola, récemment décrite (Cola proteiformis A. Chev.)[73], qui réunit, en quelque sorte à l’état normal, les différentes formes de feuilles qu’il est possible d’observer dans le genre Cola. A côté des feuilles lancéolées acuminées dont la forme rappelle celles des Eucola, on trouve en assez grand nombre sur le même rameau ou sur des rameaux séparés des feuilles composées, tantôt à 3, tantôt à 5 folioles. Nous avons cru utile de figurer un rameau de cette espèce pour montrer les affinités qui peuvent exister entre des espèces d’apparence parfois très dissemblables, ce qui est le cas pour les Eucola par rapport aux Cheirocola (Fig. 9).
Le bord du limbe dans les Eucola est un peu épaissi et légèrement incurvé en dessous.
Fig. 9. — Cola proteiformis A. Chev. Sur le même rameau on voit une feuille à une foliole, une autre à 3 folioles et enfin une feuille à 5 folioles.
Mesurant en moyenne 10 cm. à 15 cm. de long sur 3 cm. à 5 cm. de large, il peut atteindre jusqu’à 25 cm., parfois 30 cm. de longueur et 12 cm. de largeur et dans des cas exceptionnels (pousses très vigoureuses) il peut avoir 50 cm. de longueur chez C. Ballayi.
La nervure médiane est légèrement saillante en-dessus et très saillante en-dessous ; les nervures latérales I, au nombre de 5 à 8 paires, sont ascendantes toujours dépourvues d’acarodomaties à leur aisselle, réunies à l’extrémité par des arceaux plus ou moins visibles et plus ou moins réguliers ; elles sont parfois entremêlées de quelques nervures latérales II. Enfin, entre ces nervures existent des nervilles formant des réseaux plus ou moins apparents à la face inférieure.
Les feuilles très jeunes sont recouvertes d’un léger tomentum roussâtre formé de poils étoilés, plus ou moins nombreux, promptement caducs. Les feuilles adultes sont glabres et coriaces, plus ou moins luisantes en-dessus ; la face inférieure est d’un vert pâle. La dessiccation change la coloration : dans les herbiers, le limbe est noirâtre ou d’un brun-verdâtre en-dessus et d’un brun-fauve en-dessous.
Les feuilles sur les rameaux stériles et les jeunes pousses ont sensiblement la même forme que sur les rameaux fertiles, mais elles sont beaucoup plus grandes et terminées par un acumen plus allongé. Sur les rameaux stériles du Cola nitida, on observe assez souvent des feuilles dont le limbe atteint 30 cm. de long sur 12 cm. de large. Sur Cola Ballayi, ces feuilles sont encore beaucoup plus grandes.
Inflorescences. — Elles naissent seulement sur les rameaux de deuxième, de troisième ou quatrième année et rarement sur les rameaux plus âgés ayant perdu leurs feuilles depuis longtemps.
Parfois cependant, par exemple dans le C. Ballayi, on observe des inflorescences sur des rameaux non feuillés ; dans ce cas, elles s’insèrent au-dessus ou sur les côtés des cicatrices foliaires (Fig. 7).
On observe aussi assez fréquemment, notamment chez les C. verticillata et C. nitida, des rameaux de l’année fleuris (Pl. III et Pl. IV) ; les inflorescences sont alors courtes, ramassées et presque toujours réduites à des fleurs mâles, de sorte que des fruits ne naissent jamais de ces organes. Il est à peine nécessaire de faire remarquer qu’un jeune rameau aurait de la peine à supporter une fructification de Kolatier, puisqu’une seule fleur fécondée peut produire 5 ou 6 carpelles d’un poids à l’état adulte de deux à trois kilogs.
On sait du reste que, chez la plupart des représentants de la famille des Sterculiacées, les fleurs naissent non sur les jeunes rameaux, mais sur les branches déjà assez âgées. Chez le Cacaoyer en particulier, c’est sur le tronc et sur les vieilles branches latérales que s’insèrent les cabosses. Les inflorescences sont des grappes composées, pauciflores ou plus ou moins denses, à rachis un peu comprimé, avec des pédicelles ayant de 6 mm. à 12 mm. de long, mais pouvant atteindre jusqu’à 18 mm. et portant des bractées et bractéoles très caduques, ovales, très concaves, plus ou moins couvertes d’un tomentum roussâtre ou brun-rouille.
Chaque racème principal atteint de 2 cm. à 6 cm. de long ; il est souvent accompagné à sa base de deux petits racèmes courts subsessiles. Les fleurs s’épanouissent successivement et la floraison dure très longtemps. Il n’est pas rare d’observer certains arbres de ce groupe en fleurs presque toute l’année.
Du reste le calice est marcescent et persiste longtemps après la floraison, même si les fleurs ont avorté.
Pendant l’anthèse, les fleurs dégagent un parfum nauséeux.
Fleurs. — Les espèces de la section Eucola présentent une hétérogamie des plus remarquables. Certains arbres ne produisent exclusivement que des fleurs mâles ; la plupart des individus produisent un grand nombre d’inflorescences exclusivement mâles, puis quelques grappes avec des fleurs hermaphrodites à la base et des fleurs mâles au sommet. Quelques plants ont des fleurs mâles et des fleurs hermaphrodites entremêlées sur toutes les inflorescences et quelquefois une grappe de fleurs mâles est surmontée d’une ou plusieurs fleurs hermaphrodites ; il est très rare de rencontrer des Kolatiers portant plus de fleurs hermaphrodites que de fleurs mâles. Enfin nous n’avons jamais rencontré un Kolatier chargé exclusivement de fleurs hermaphrodites.
Dans toutes les espèces, même avant leur épanouissement, les fleurs mâles sont faciles à distinguer des hermaphrodites. Le calice, qui a une préfloraison valvaire dans les deux cas, forme un petit bouton subglobuleux et blanc tomenteux chez les premières. Chez les secondes, il est plus gros, nettement obovoïde et un peu apiculé au sommet. Quand les fleurs s’épanouissent, on constate un dimorphisme encore plus accusé : les mâles ont un calice de petite taille et rotacé : dans les hermaphrodites, il est souvent beaucoup plus grand et toujours campanuliforme.
Les premières, lorsqu’elles sont épanouies, mesurent souvent que 12 à 20 mm. de diam., les secondes peuvent atteindre 30 à 40 mm. Dans les deux sortes de fleurs et dans toutes les espèces, les lobes sont ovales, lancéolés, longs ordinairement de 5 à 9 mm., plus ou moins aigüs au sommet, blancs-tomenteux à l’extérieur, recouverts en dedans de quelques poils étoilés, jamais complètement glabres sur l’une ou l’autre face.
Un autre caractère de peu d’importance mais d’une constance remarquable se retrouve chez toutes les espèces de la section : nous voulons parler de la coloration. Le calice est d’un blanc-crême, mais il présente en dedans au fond du tube une tache d’un pourpre noirâtre qui se prolonge jusqu’à mi-hauteur des lobes, le long des 3 nervures, visibles à la face interne de chaque lobe. Ces stries pourpres n’existent pas à l’extérieur, mais elles sont constantes à la face interne ; une seule race en est privée et a les fleurs complètement blanches, c’est le Cola nitida A. Chev. s.-sp. C. alba A. Chev. du Kissi.
La forme de l’androcée est assez constante dans toutes les espèces, mais elle varie suivant le degré d’épanouissement de la fleur : du fond du calice s’élève un petit stipe grêle, pubescent, parfois presque nul, parfois atteignant 3 mm. de long. Ce stipe se dilate brusquement et se termine par un écusson orbiculaire, aplati ou même concave en-dessus ; sur son bord, cet écusson (qui n’est autre qu’un connectif commun adné à un pistil central avorté réduit à 5 ou 6 petits points faisant saillie au centre de l’écusson et en-dessus) porte vingt logettes[74] considérées comme des anthères. Ces logettes sont disposées en deux séries de 10, superposées.
Chacune constitue une loge à déhiscence longitudinale, mais lorsque celle-ci est opérée, il reste à l’intérieur un petit dissépiment longitudinal qui pourrait faire croire à l’existence d’une anthère à deux loges.
Le sagace observateur qu’était Pierre, a interprété de la manière suivante l’androcée des Eucola. Il correspondrait à 5 étamines seulement, ces étamines étant verticales (comme dans d’autres sections du genre Cola) et chacune à deux loges avec déhiscence longitudinale : les étamines auraient leurs loges écartées ; en outre, il se serait produit une cloison transversale dans chaque loge amenant ainsi la constitution d’un thèque supérieur et d’un thèque inférieur, c’est-à-dire la formation des 20 logettes existantes. Cette transformation a pu se produire pendant l’évolution des ancêtres des Eucola, mais dans les espèces actuelles, même à l’état très jeune les 20 thèques sont bien distincts et écartés les uns des autres.
Les logettes staminales de l’étage supérieur font saillie au-dessus du disque qu’elles entourent ; avant leur déhiscence, elles convergent vers le centre en formant une masse capitée ; plus tard cette masse s’ouvre et forme une urcéole, enfin elle s’étale en disque ; la pointe des loges fait saillie sur les bords du disque en produisant 10 crénelures et 10 dents dont 5 parfois plus profondes. Ainsi que nous l’avons exposé dans un chapitre précédent, ces dispositions se retrouvent dans toutes les espèces d’Eucola dont les fleurs sont connues.
Les fleurs hermaphrodites portent un gros gynécée ovoïde formé de 5 ou 6 carpelles (parfois moins et parfois aussi jusqu’à 8) libres, mais pressés les uns contre les autres, blancs-tomenteux à l’extérieur, oblongs, surmontés chacun d’un stigmate sessile, étroit, courbé en crosse dès sa base et descendant le long du carpelle jusqu’à mi-hauteur de celui-ci, parfois en s’en écartant un peu, le plus souvent en s’appuyant à sa surface sans lui adhérer ; l’extrémité de chaque stigmate est subaiguë ou obtusiuscule, mais jamais en large écusson, comme l’a figuré à tort Schumann pour C. vera (Monographie, fig. 2, C, p. 125).
A l’intérieur de chaque carpelle, à l’angle interne, c’est-à-dire sur la face supérieure lorsqu’il sera étalé, s’insèrent 6 à 16 ovules disposés sur deux lignes et en ordre alternant. Ces ovules sont anatropes, pendants dans la cavité ovarienne, sessiles et insérés par un large ombilic.
Quant aux organes mâles des fleurs hermaphrodites, ils se réduisent à 20 logettes (parfois plus ou moins suivant le nombre des carpelles) insérés sur deux rangs à la base du gynécée. A la partie basale de chaque carpelle et intimement soudées à lui on observe, en effet, 4 logettes disposées en X, c’est-à-dire deux supérieures divergentes par le haut et deux inférieures divergentes par le bas. Ces logettes sont normalement constituées et renferment des grains de pollen. Cependant Tschirch et Œsterle ne pensent pas que le pollen soit normal, de sorte que les fleurs seraient exclusivement femelles.
Ces logettes staminales desséchées persistent longtemps à la base des jeunes carpelles. Ceux-ci, à mesure qu’ils se développent, s’étalent en étoile tout autour du réceptacle leur donnant insertion. Le plus souvent ils sont étalés dans un plan, parfois au contraire ils sont décombants ou même ascendants.
Fréquemment les poils qui les recouvrent tombent rapidement, mais dans certaines races, les carpelles restent jusqu’à un âge avancé couverts d’une pulvérulence d’un blanc de neige.
L’organogénie des ovules après la fécondation mérite d’être signalée :
Lorsque la jeune graine n’a encore que la taille d’un petit pois, sous un double tégument membraneux existe une poche remplie de mucilage qui n’est autre que le sac embryonnaire.
La membrane qui le limite est tapissée de petites écailles brunes paraissant provenir du nucelle résorbé et plus ou moins analogues aux écailles tapissant la paroi interne des carpelles. Nous reviendrons sur ces écailles dans l’étude anatomique.
A l’intérieur du sac embryonnaire et dès le jeune âge, on trouve de très bonne heure l’embryon coloré en rouge (si la noix doit être rouge plus tard) ; il est ovoïde, plus renflé du côté du hile et dans le C. acuminata présente une section tetra ou pentagonale correspondant aux quatre ou cinq cotylédons. Après résorption du sac embryonnaire, la graine doit encore rester plusieurs mois sur l’arbre avant d’arriver à complet développement.
Fruit. — On sait que chaque fleur femelle fécondée peut donner en général 5 follicules dérivant des 5 carpelles de l’ovaire, rarement plus de 5 et assez souvent moins. La forme et les dimensions de ces fruits varient beaucoup d’une espèce à l’autre, aussi fournissent-ils d’excellents caractères de classification.
Ces follicules sont insérés en verticille autour du pédoncule de la fleur devenu ligneux et considérablement accru pendant la maturation.
Les graines s’insèrent sur deux larges lignes placentaires situées tantôt sur les bords de la feuille carpellaire dans les espèces de la section Cheirocola ; au contraire, dans les espèces de la section Eucola, elles s’insèrent sur deux lignes rapprochées de part et d’autre de la crête dorsale qui correspond à la nervure médiane de la feuille carpellaire ; elles sont par conséquent opposées à la suture inférieure ou ventrale par où se fait la déhiscence du fruit (Fig. 13).
Chaque follicule presque adulte présente dans les espèces de ce groupe :
1o Une crête dorsale ou interne ou supérieure correspondant à la face placentaire ; 2o un sillon ventral, externe ou inférieur correspondant à la ligne de déhiscence, chez les espèces qui s’ouvrent à maturité ; ce sillon ventral est souvent à son tour bordé par deux rebords ou fausses crêtes ; 3o les côtés sont tantôt lisses ou grossièrement bombés par la protubérance des noix ; dans certaines races, ils sont fortement verruqueux-scoriacés et les verrues s’étendent parfois jusqu’au sillon ventral.
La forme générale d’un carpelle adulte est ovoïde-allongée avec la face dorsale ordinairement beaucoup plus bombée que l’autre, la dimension est de 5 à 12 cm. de long sur 3 à 7 cm. de large. Certains carpelles très robustes dans C. acuminata et dans C. Ballayi, atteignent jusqu’à 15 et 20 cm. de long.
Le follicule, dans la partie basilaire qui ne renferme pas de graines, s’amincit plus ou moins en stipe ; le sommet se termine par un rostre (base du stigmate accrescent) qui a souvent dans le jeune âge la forme d’un bec d’oiseau et qui parfois se prolonge en pointe recourbée vers la face ventrale.
En outre, la forme de ces fruits varie énormément d’une espèce à l’autre comme aussi leur disposition par rapport à l’axe du pédoncule : ils sont parfois étalés horizontalement, parfois réfléchis, rarement un peu ascendants.
Déhiscence des fruits. — Tous les Kolatiers de la section Eucola que nous avons observés en Afrique tropicale, soit dans les plantations, soit dans la forêt vierge, produisent des fruits qui nous ont paru toujours indéhiscents. Les indigènes reconnaissent que les noix sont mûres quand l’exocarpe prend une teinte vert-jaunâtre ou gris-terreux dans certaines formes de C. acuminata. Ils les cueillent dans cet état et les ouvrent avec un couteau pour retirer les noix. Les fruits qui ont passé la maturité restent adhérents à l’arbre, les fourmis creusent souvent des galeries dans le péricarpe pour se nourrir du mucilage qui en découle, elles attaquent même le tégument des graines et mettent les noix à nu ; mais, dans ce cas encore, nous n’avons jamais vu le follicule s’ouvrir en deux valves, comme cela se produit dans les espèces de la section Macrocola.
Tous les colons et agents de culture que nous avons questionnés nous ont eux aussi assuré que les fruits des Kolatiers ne s’ouvraient pas à maturité pour mettre les graines en liberté.
Cependant, d’après d’autres témoignages, la déhiscence peut s’opérer soit dans certaines races encore mal connues, soit dans des conditions spéciales que pour notre part nous n’avons pas observées. Pour l’Ombéné du Gabon, qui n’est autre que Cola acuminata, H. Baillon rapporte, d’après Griffon du Bellay, que les follicules s’ouvrent longitudinalement suivant leur bord interne ou supérieur. Cette affirmation aurait besoin d’être contrôlée, car l’un de nous a observé, soit à San-Thomé, soit au Dahomey, des follicules mûrs de cette espèce qui n’étaient pas ouverts et du reste, dans tous les Cola d’autres sections à fruits connus, c’est par la suture ventrale que s’opère la déhiscence.
Enfin, E. Heckel a publié, en 1898[75], une très belle photographie de M. Guesde, montrant une négresse qui vend des Kolas à la Guadeloupe. Elle tient dans ses mains une corbeille remplie de cabosses (ou follicules) de Kolatier dont la face ventrale est entrouverte, de sorte qu’on aperçoit par l’entrebaillement les noix contenues à l’intérieur. Ces fruits, qui paraissent appartenir à une variété du Cola nitida, sont donc incontestablement déhiscents. Nous n’avons jamais rien vu de semblable en Afrique, où, même sur les lieux de production, on vend les noix de Kola sorties de la cabosse et même débarrassées de leur tégument.
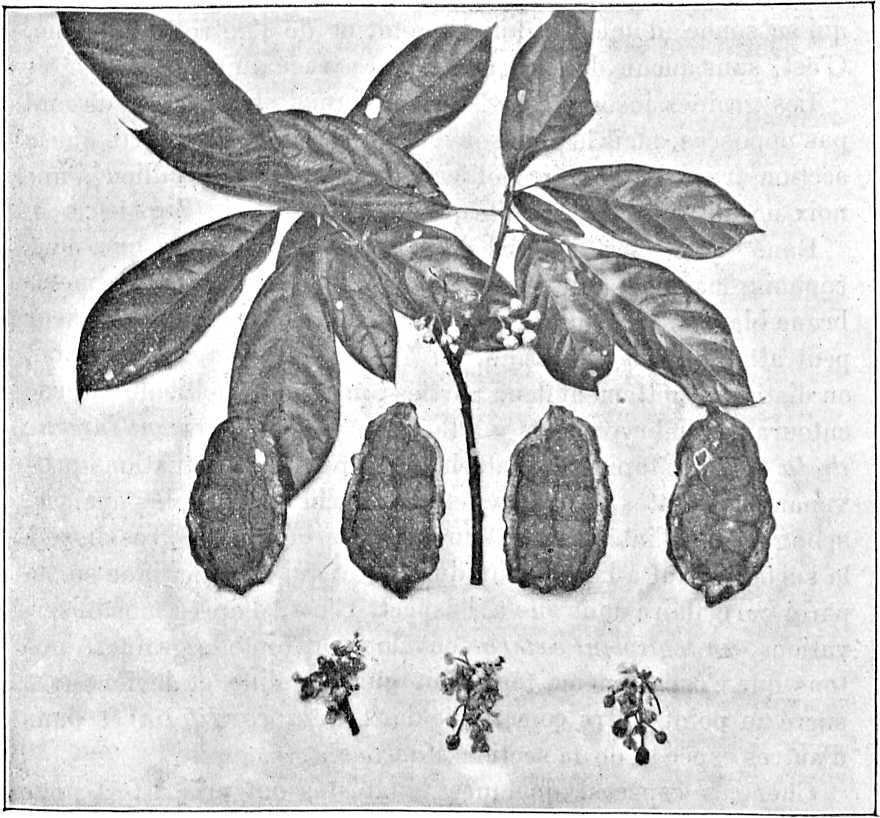
Fig. 10. — Cola nitida A. Chev. Rameau en fleurs, follicules coupés longitudinalement, inflorescences.
Dans le C. sphærocarpa, la déhiscence s’opère suivant deux lignes opposées partant du rostre du follicule et se rejoignant peu à peu vers la base. Il se forme ainsi deux valves et le plan de la déhiscence est perpendiculaire au plan médian du carpelle.
Graines. — Les graines s’insèrent sur deux rangs correspondant aux deux lignes placentaires de chaque côté de la crête supérieure ou dorsale du follicule. Comme celui-ci est plus ou moins étalé, elles sont donc comme suspendues dans sa cavité et fixées à la paroi de l’endocarpe par un large hile arrondi qui peut avoir jusqu’à 4 à 5 cm. de diamètre. En dehors du placenta, ce hile présente une légère échancrure et du côté interne il donne attache à une lame blanche mince, courte, mais large et qui se soude, d’une part au placenta, et de l’autre à la graine. C’est, sans aucun doute, une dernière trace du raphé.
Les graines insérées sur les deux lignes placentaires ne sont pas opposées, mais le plus souvent alternes, de telle sorte que la section transversale d’un follicule passant par le milieu d’une noix ne fait qu’effleurer celle qui est placée à côté (Fig. 10).
Dans toutes les espèces de la section Autocola que nous connaissons, l’amande (embryon) est enveloppée par une membrane blanchâtre, spongieuse, facile à déchirer, dont l’épaisseur peut atteindre jusqu’à 3 mm. ou 4 mm. Dans cette membrane, on distingue nettement deux parties : une mince pellicule interne entourant l’embryon sans y adhérer, c’est le tégument interne de la graine, tapissé à l’intérieur de petites ponctuations provenant des restes du nucelle, et une couche externe plus épaisse, spongieuse à l’intérieur, entourant toute la graine, très lisse à la surface, sauf à la hauteur du hile et qui se continue sur la paroi carpellaire dont elle a l’aspect. C’est, d’après nos observations, un tégument externe enveloppant toute la graine. Ajoutons que c’est ce même tégument qui se gélifie et devient très sucré au point d’être comestible dans Cola cordifolia et dans d’autres espèces de la section Macrocola.
Chez ces espèces, quelques botanistes ont pris à tort pour une arille, le tégument gélifié. C’est certainement parce qu’il n’avait pas vu de Kola à l’état naturel que Baillon assimile « le véritable Kola à la graine d’une sterculiacée souvent réduite à un gros embryon, plus ou moins globuleux, charnu, à 2, 3 ou 4 cotylédons épais[76] ». En réalité, la graine possède toujours un tégument blanc que les indigènes enlèvent après sa récolte. Ce que nous appelons une noix de Kola est un embryon, c’est-à-dire une graine sans albumen débarrassée de son tégument.
Le nombre des cotylédons épais et charnus, constituant l’amande, varie de 2 à 7. Dans le C. nitida et toutes ses variétés, il est constamment de deux, dans les races cultivées. Dans les formes sauvages de la forêt de la Côte d’Ivoire, appartenant à la race C. pallida, c’est à peine si on trouve, sur 1.000 graines, une noix à 3 cotylédons.
Dans les quatre autres espèces qui nous sont connues, chaque noix compte au moins 3 cotylédons, le plus souvent 4 ou 5 et parfois jusqu’à 7 dans Cola Ballayi.
Il serait intéressant de rechercher si les hybrides qui doivent probablement apparaître là où les Cola nitida, Cola acuminata et Cola verticillata vivent en mélange, ne produisent pas des noix à deux cotylédons et d’autres noix de 3 à 5 cotylédons sur les mêmes arbres.
Une communication de Johnson, ancien directeur du Jardin d’Aburi, faite au Jardin de Kew, permet de le supposer.
L’embryon, chez toutes les espèces productrices de Kola, est rouge ou blanc, parfois rose-jaunâtre ou verdâtre. Nous reviendrons sur ces colorations dans un prochain chapitre.
Ajoutons, pour terminer, que les amandes de Kola sont de taille très variable dans une même espèce et parfois dans une même variété. Elles pèsent ordinairement de 8 grammes à 25 grammes, mais on rencontre aussi des noix qui ne pèsent que 2 ou 3 grammes et quelques-unes atteignent le poids de 100 grammes.
Nous n’avons observé ces grosses amandes que très rarement et dans certaines parties de la Côte d’Ivoire seulement.
Le nombre des noix par cabosse est très variable : on en observe de 1 à 12, le plus fréquemment, il en existe 5, 7 ou 9.
Une seule fleur peut produire de 1 à 7 follicules, soit de 30 grammes à 200 grammes de noix fraîches, mais il est rare d’observer sur un même arbre plus de 20 à 30 groupes de follicules parvenus simultanément à complet développement.
CHAPITRE VI.
Caractères histologiques des Kolatiers.
L’histologie des organes végétatifs des arbres du genre Cola n’a fait l’objet jusqu’alors d’aucun travail d’ensemble, c’est pourquoi nous donnerons ici, en résumé, les résultats de l’étude comparée à laquelle nous nous sommes livrés.
Quelques auteurs ont cependant traité des fruits et des graines et parmi eux nous citerons : Chodat et Chuit[77], Zohlenhofer[78], Heckel[79], Hartwich[80] et plus particulièrement une très consciencieuse étude du fruit et de la graine des C. vera et Ballayi de MM. Tschirch et Œsterlé dans leur Atlas classique de Pharmacognosie[81].
Quelques observations générales sont également notées dans l’ouvrage de Solereder[82], et en ce qui concerne l’appareil gommifère, si spécialement caractéristique des Sterculiacées, nous renverrons pour la bibliographie au mémoire de M. Doussot[83]. Nous rappellerons seulement que ces poches à mucilage ont été tout d’abord étudiées par Trécul en 1867, puis par Van Tieghem en 1884-1885.
RACINE.
L’étude histologique de la racine est d’intérêt secondaire, car cet organe présente la structure normale des racines de Dicotylédons, avec périderme péricyclique exfoliant l’écorce et poches à mucilage réparties dans les rayons médullaires de la région libérienne. Plus tard, de nouvelles formations subérophellodermiques, exfolient successivement les couches externes précédemment formées en même temps qu’elles donnent de nouveaux tissus. Dans les jeunes racines, le nombre des poches à mucilage est variable avec les espèces ou variétés considérées.
TIGE.
La tige jeune des Kolatiers étudiés présente un épiderme à cuticule épaisse sur lequel s’appuient de deux à quatre assises de cellules à parois minces, limitées en-dedans par une couche de collenchyme à épaississements caractéristiques, se sclérifiant dans les tiges plus âgées. Dans le parenchyme cortical sous-jacent, les poches à mucilage sont nombreuses et réparties généralement sur un seul rang ; la plupart ont leurs cellules de bordure très régulièrement disposées et entières ; mais parfois ces poches à mucilage s’agrandissent par gélification et rupture des cellules de bordure, et il n’est pas rare de trouver deux de ces éléments confluents l’un avec l’autre. Le liber est partagé par de larges rayons médullaires en lames minces, coiffées extérieurement par des amas de fibres correspondant au péricycle ; de très bonne heure, ce tissu libérien se découpe par l’apparition de bandes transversales fibreuses formant un liber stratifié dont la structure est typique pour les plantes du groupe des Malvales. Les tubes criblés se différencient par un cloisonnement des cellules issues du cambium qui découpe de petites cellules compagnes, très visibles dans les jeunes tissus. Plus tard, ces éléments criblés épaississent leurs parois et constituent des lames de tissu aplati, comprimé entre les bandes fibreuses de soutien (Fig. 14).
Fig. 14. — Coupe transversale d’un fragment d’écorce du tronc de C. nitida, passant par la région libérienne. — Rm, rayon médullaire ; tc, plages de tubes criblés ; f, fibres libériennes ; pm, poche à mucilage ; pl, parenchyme libérien ; cp, cellules ponctuées à parois légèrement lignifiées.
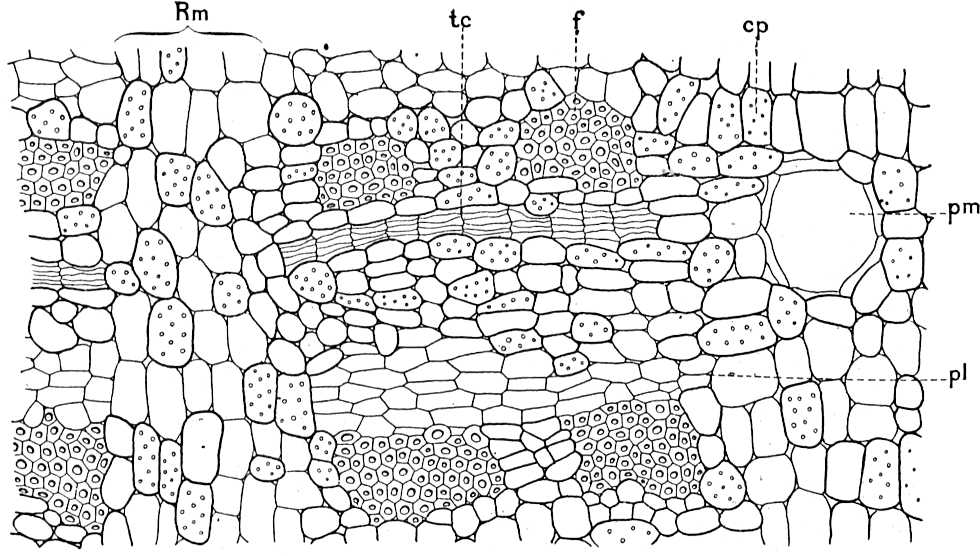
Le bois est riche en vaisseaux rayés ou ponctués, et, de bonne heure, le parenchyme ligneux, comme celui des rayons médullaires, se lignifie plus ou moins fortement pour former un cylindre assez compact ; le centre est occupé par une moelle parenchymateuse ou un peu scléreuse composée de grands éléments et donnant asile également à de nombreux canaux à mucilage. Quelques-uns de ces derniers se montrent inclus dans la zone externe médullaire sclérifiée, mais leurs cellules de bordure restent le plus souvent parenchymateuses.
L’oxalate de calcium, toujours abondant et cristallisé en mâcles, est réparti dans les parenchymes, surtout dans l’écorce et la moelle et plus particulièrement autour du collenchyme externe et des amas fibreux périlibériens ; cette disposition est surtout facile à observer en coupe longitudinale.
Des péridermes, dont le premier est sous-épidermique, apparaissent successivement dans la partie externe de l’écorce et donnent naissance à des lames subéreuses et à des phellodermes très développés, dans lesquels de nouvelles formations se développent qui exfolient les précédentes. Cette écorce secondaire renferme de nombreuses poches à mucilage.
En même temps, les lames libériennes s’accroissent radialement et leur tissu conserve la structure stratifiée qu’il affectait dans le début.
Aug. Chevalier et Ém. Perrot. Les Kolatiers.
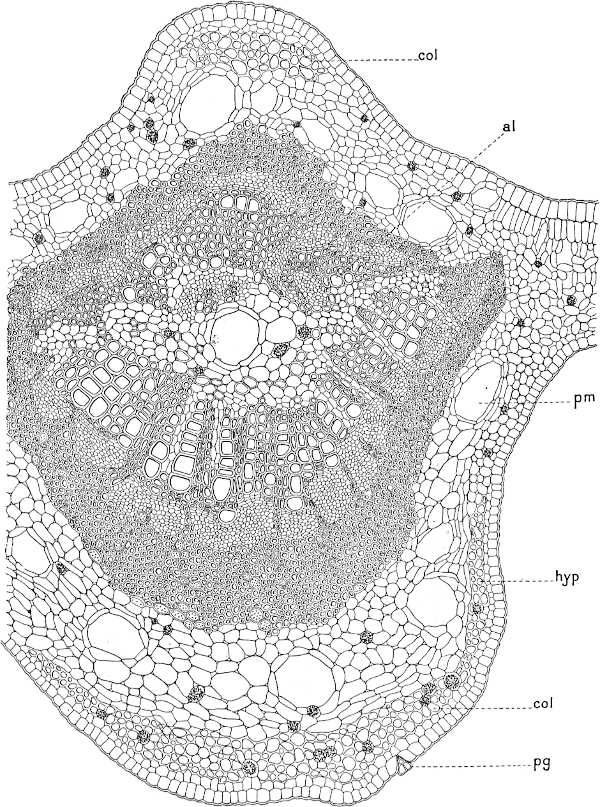
Fig. 15. — Coupe transversale du pétiole, à la base du limbe. — al, amas libérien péridesmique ; col, collenchyme ; hyp, hypoderme ; pm, poche à mucilage ; pg, poil glanduleux. G = 100 d. environ.
On remarque également des bandes de parenchyme libérien et, dans les rayons médullaires, des canaux mucilagineux (pm, Fig. 15).
Les variations de structure de la tige chez les diverses espèces ou variétés sont peu importantes et ne paraissent avoir aucune valeur systématique.
FEUILLE.
L’étude anatomique de la feuille est plus intéressante et doit surtout porter sur les particularités de structure du système conducteur dans le pétiole et dans le limbe.
1o Pétiole. — Le pétiole des Kolatiers est toujours relativement long et présente à son point d’attache avec la tige, un renflement très accentué. De même à son extrémité, il se renfle à nouveau pour permettre au limbe foliaire ses mouvements nyctitropiques, fonction ici de l’éclairement solaire[84]. L’histologie comparée de cet organe est donc délicate, car on constate dans la répartition et le développement des divers tissus, des modifications assez profondes suivant que l’examen microscopique porte sur telle ou telle de ses parties.
Le système fasciculaire est composé typiquement d’un petit nombre de faisceaux libéro-ligneux, généralement de cinq à neuf, qui se rallient à un faisceau détaché du cylindre central de la tige, par de longues cellules annelées ou réticulées.
Il est à noter aussi que l’examen histologique est rendu plus délicat par la difficulté éprouvée à faire des coupes minces, sur des échantillons secs d’herbier, à cause de l’abondance chez certaines espèces ou variétés, des poches et des cellules à mucilage.
Si l’on peut disposer de matériaux frais, il convient de les placer, aussitôt leur récolte, dans l’acool assez fort, ce qui rendra la préparation des coupes beaucoup plus aisée, le mucilage étant ainsi coagulé.
La caractéristique histologique générale du pétiole devra toujours être recherchée dans la partie moyenne de cet organe à égale distance des deux renflements (1, Fig. 17).
La section est alors arrondie, avec un épiderme assez fortement cuticularisé, interrompu çà et là, par quelques stomates et surtout par des poils capités courts pluricellulaires, munis d’un pied formé d’une seule cellule. La membrane de ces poils est assez épaissie et ils sont toujours très enfoncés dans l’épiderme, dépassant à peine la surface (pg., Fig. 15) ; il n’existe pas de poils tecteurs sur le pétiole adulte.
Dans la plupart des espèces, le collenchyme de soutien qui forme une lame circulaire est séparé de l’épiderme par une à trois assises de cellules parenchymateuses, sorte d’hypoderme nettement apparent ; le collenchyme à membrane plus ou moins épaissie est naturellement plus abondant vers la partie qui correspond à la face inférieure du limbe (hyp. et col., Fig. 15).
Dans le parenchyme conjonctif qui vient ensuite, il n’y a à signaler que la présence de poches sécrétrices à mucilage, toujours avec cellules de bordure bien apparentes ; ces poches sont le plus souvent réparties en un seul cercle autour du système conducteur central, mais on trouve parfois quelques-unes de ces mêmes formations en dehors de ce cercle.
Le système fasciculaire débute par une bande de tissu mécanique, formé de deux séries d’éléments. Les uns, très allongés, fibreux, répartis en amas irréguliers de forme et de dimension, sont réunis entre eux par d’autres éléments de diamètre beaucoup plus grand, ponctués, sclérifiés aussi, mais à peu près isodiamétriques. L’ensemble forme ainsi une bande fibroscléreuse périlibérienne irrégulière, dont les prolongements s’avancent vers le corps ligneux pour délimiter extérieurement et protéger les amas de tissu criblé.
Le liber comprend donc une série de ces amas répartis au milieu du parenchyme, formant une lame qui peut n’être pas continue par suite de la pénétration des prolongements de la bande sclérenchymateuse qui vient d’être décrite.
Quant au bois, il est surtout vasculaire, en anneau complet, mais dans lequel se distinguent des amas plus ou moins apparents ; l’un de ces amas vasculaires, toujours plus volumineux, correspond à la face inférieure et indique la symétrie bilatérale de l’organe.
La région centrale du péridesme, correspondant à la moelle, renferme toujours soit des îlots de tissu criblé accompagnés de quelques vaisseaux, soit une ou plusieurs lames libéro-ligneuses, dont il faut rechercher l’origine dans l’invagination de fragments de l’anneau libéro-ligneux normal (al, Fig. 15 et fp, Fig. 17).
Il ne s’agit pas ici de formations surnuméraires analogues à celles qui sont bien connues chez les plantes des nombreuses familles à tissu conducteur médullaire surnuméraire ; la tige des Kolatiers ne renfermant, en effet, jamais de semblables formations dans la moelle[85], elles ne sauraient donc passer de la tige au pétiole.
Au centre, on trouve enfin dans le parenchyme une, deux ou trois poches à mucilage.
Quant à l’oxalate de calcium, il est très abondant et toujours en mâcles cristallines ; quoique réparti çà et là, et en apparence sans ordre, il se localise cependant de préférence dans deux régions : au pourtour du sclérenchyme périlibérien et autour du collenchyme externe.
Le mucilage n’est pas non plus uniquement excrété par les poches caractéristiques des Sterculiacées, mais encore dans des cellules un peu hypertrophiées dont l’examen permet aisément de se rendre compte de l’origine de cette formation. De la paroi interne partent, en effet, des amas laissant apercevoir de fines stries, qui indiquent les couches successives du dépôt de la matière (cm, Fig. 18).
L’amidon est abondant, et l’orcanette acétique décèle dans un très grand nombre de cellules de gros globules ou un contenu transparent, sur la nature desquels il est difficile d’émettre une opinion.
Renflement basilaire. — Des coupes pratiquées vers le point d’insertion sur la tige, montrent un certain nombre de modifications dans la structure type.
On remarque d’abord que la sclérification périlibérienne n’existe pas, et c’est à peine si des amas cellulaires réagissent à la matière colorante, de façon différente des éléments du parenchyme qui les entoure. Néanmoins, les cellules qui le composent sont plus allongées, à parois plus épaisses, et au fur et à mesure que le renflement diminue, celles-ci commencent à prendre les colorants ce qui indique que la sclérification s’opère et bientôt les paquets de fibres apparaissent nettement différenciés. Plus on s’éloigne de la base, plus le phénomène s’accentue, et peu à peu, les cellules avoisinantes s’épaississent à leur tour pour réunir les premières, en formant un anneau de soutien complet, mais le plus souvent très inégal d’épaisseur (1, Fig. 17).
Fig. 16. — Coupe schématique au niveau du renflement basiliaire, au point d’insertion des pétioles sur la tige. — m, mâcles d’oxalate de calcium ; fll, amas libéro-ligneux ; pm, poche à mucilage.
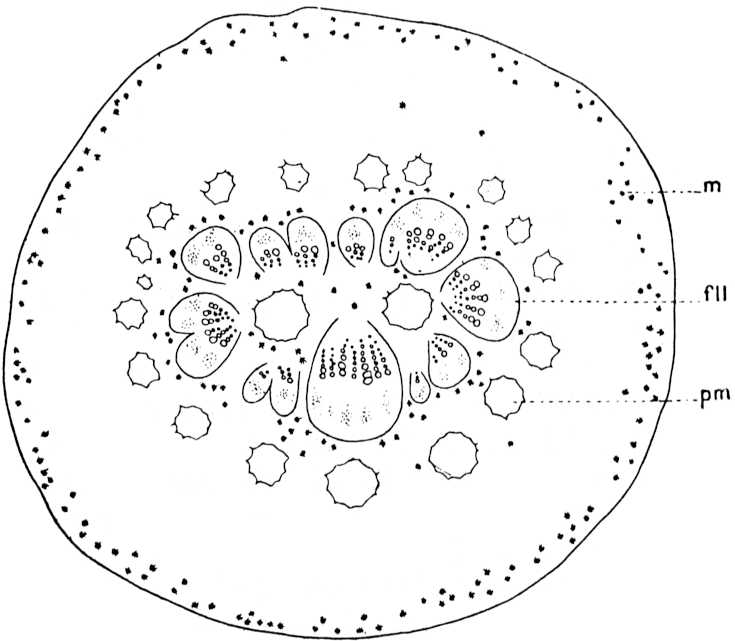
Le système vasculaire est, à la base du pétiole, divisé en un certain nombre de faisceaux isolés, formés de lames de vaisseaux, séparées par des rayons médullaires parenchymateux ; l’un d’entre eux, plus volumineux, indique le plan de symétrie. Quant au liber, il ne forme pas une lame homogène, mais se compose des amas de tissu criblé correspondant aux faisceaux ligneux et répartis au milieu du parenchyme ; souvent il existe plusieurs îlots de tissu criblé par faisceau vasculaire.
Si les coupes ont été faites aussi près que possible de la tige, le pétiole ne présente généralement pas de faisceaux libériens ou libéro-ligneux dans le péridesme central, mais dès qu’on s’écarte quelque peu de cette région, on voit apparaître des invaginations de la bande libérienne qui pénètrent vers le centre et ne tardent pas à y former un faisceau qui s’isole de l’anneau normal et entraîne avec lui quelques vaisseaux (Fig. 2, 3, 4, 5, 17).
Le plus généralement, ces faisceaux restent petits et n’acquièrent un développement véritablement important que plus tard et surtout dans la zône motrice ; néanmoins, il en existe toujours en nombre variable avec les espèces ou peut-être aussi avec les individus, sur toute la longueur du pétiole. Pour affirmer leur valeur systématique, il sera nécessaire de compléter cette étude par l’examen de nombreux échantillons de provenances les plus variées.
Aug. Chevalier et Ém. Perrot. Les Kolatiers.
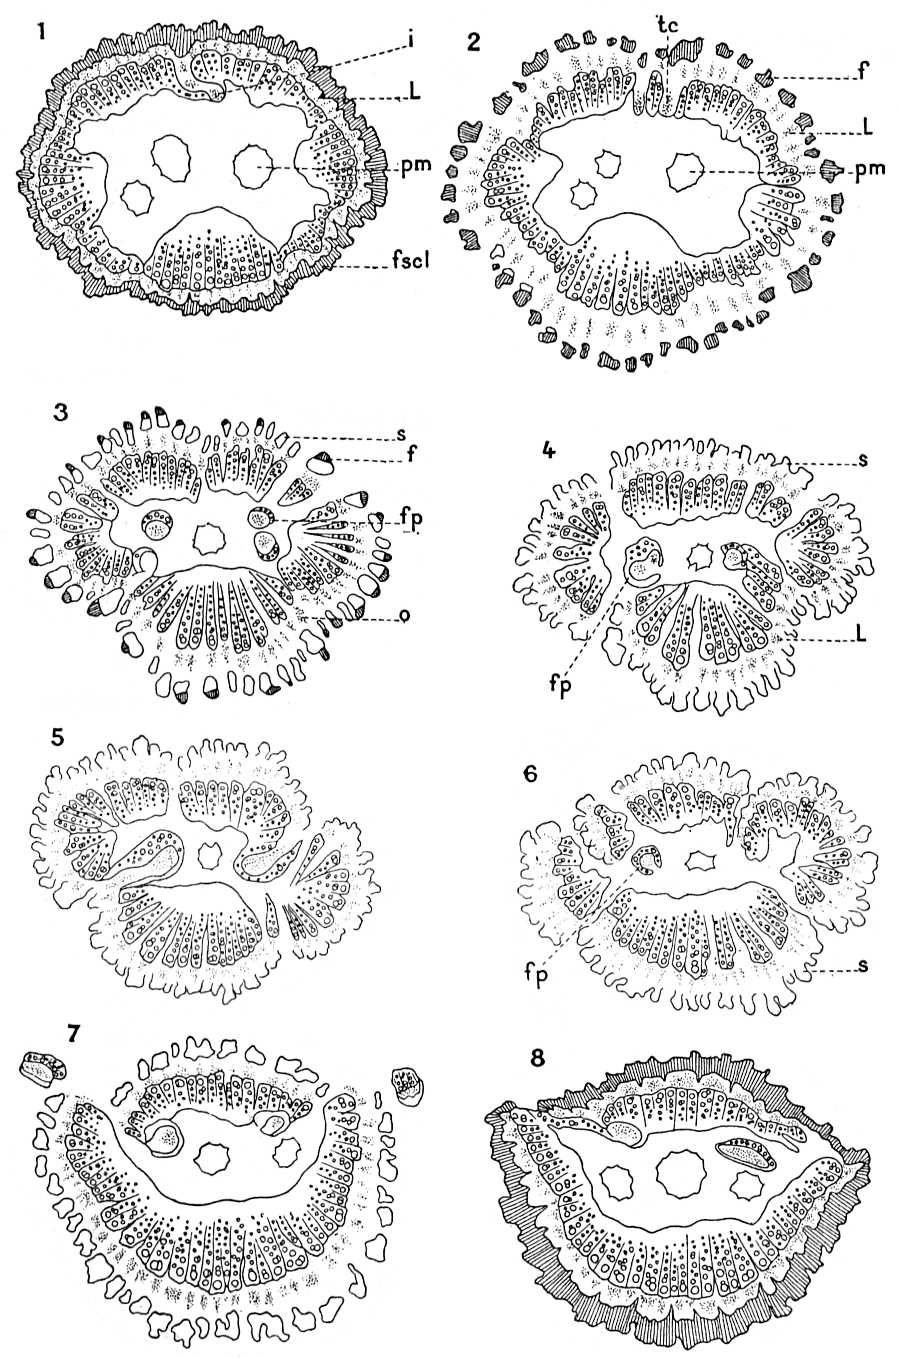
Fig. 17. — Figures schématiques du système fasciculaire du pétiole, au niveau du renflement moteur. — L, liber ; f, amas fibreux ; fscl, anneau mécanique fibro-scléreux ; pm, poches à mucilage ; s, gaine péri-libérienne non sclérifiée mais épaissie et différenciée ; fp, faisceaux péridesmiques. Les coupes vont du pétiole (1) vers le limbe — (2) et montrant en 2, 3, 4, 5, 6, 7, les modifications de structure facilitant les mouvements de l’organe ; nervure médiane à la base du limbe.
Renflement moteur. — Au sommet du pétiole dans le renflement moteur, les modifications sont importantes et nous les avons étudiées sur de nombreux échantillons, provenant soit des serres de l’Ecole supérieure de Pharmacie, soit de celles du Muséum d’Histoire naturelle, soit enfin de l’herbier de l’Afrique Occidentale dressé par les soins de l’un de nous.
A quelques détails près, on peut ramener ces modifications aux points suivants : augmentation du tissu parenchymateux, disparition du tissu de soutien, dislocation du cylindre central et augmentation du nombre et du volume des faisceaux conducteurs dans la région péridesmique.
La série de coupes ci-jointe, choisies au milieu d’une cinquantaine effectuées dans le renflement moteur du C. nitida montre ces différentes modifications qu’il n’est pas inutile de décrire un peu plus en détail. Dans les dessins schématiques reproduits, nous ne nous sommes occupés que du système fasciculaire, car le parenchyme périfasciculaire externe ne présente, en dehors de son volume, aucun autre intérêt histologique (Fig. 17).
La figure 1 montre la structure type décrite plus haut : anneau fibro-scléreux complet ; liber avec nombreux amas de tissu criblé ; bois en anneau compact, coupé seulement par des rayons médullaires étroits, et, vers la face supérieure, une invagination de tissu libérien (1, Fig. 17). Il n’y a pas de faisceaux péridesmiques à cet endroit.
Dès que l’on pénètre dans le renflement, les cellules scléreuses ponctuées, servant de lien aux îlots fibreux du tissu mécanique externe, disparaissent ; elles sont restées parenchymateuses, quoique plus volumineuses en général que leurs voisines.
Les îlots libériens s’allongent, et, dans l’échantillon examiné, deux d’entre eux pénètrent (2, tc) vers le centre. Les éléments lignifiés du bois n’existent plus, et il ne reste que les rangées radiales de faisceaux, formant encore une sorte d’anneau régulier.
Dans la coupe suivante (3, Fig. 17), la dislocation fasciculaire s’est accentuée, des masses de tissu libéro-ligneux, s’écartent et sont séparées par du parenchyme, en même temps que, dans la zone centrale péridesmique, on remarque la présence de quatre amas libériens, ayant à leur centre quelques fibres et à un certain endroit de leur périphérie quelques vaisseaux ligneux. Le nombre des poches à mucilage est passé de trois à une.
Remarquons, enfin, que le tissu de soutien périlibérien n’est plus constitué que par des amas non sclérifiés, sauf dans leur zone externe où quelques fibres subsistent encore ; néanmoins, comme nous l’avons dit, ces éléments se différencient de leurs voisins par leur électivité spéciale pour certaines matières colorantes, mais ils ne prennent plus le vert d’iode, dans la méthode de double coloration avec cette substance et le carmin boraté ou aluné.
Dans la figure 4, les fibres ont totalement disparu ; des filaments libéro-ligneux plus importants ont glissé vers le centre en même temps que deux masses vasculaires se sont quelque peu rejetées latéralement. Ces phénomènes qui s’accentuent (Fig. 5 et 6) persistent sur la plus grande longueur du renflement.
On remarquera combien cette disposition est favorable au mouvement de haut en bas que subit cette portion du pétiole. La masse inférieure résistante, forme un cordon rigide, mais élastique et la dislocation du reste de l’anneau libéro-ligneux en amas séparés par de larges espaces parenchymateux rendent les oscillations du pétiole faciles à s’effectuer. Grâce à ces modifications dans la structure fasciculaire, la feuille possède un dispositif mécanique, sorte de véritable articulation, des mieux adaptées aux nécessités physiologiques de l’organe.
Le renflement se prolonge presque dans la nervure médiane du limbe et la figure 6 accuse déjà une disposition nouvelle des différents tissus qui fait pressentir celle qui se rencontre plus tard dans la nervure médiane, c’est-à-dire groupements des fragments libéro-ligneux, en deux arcs, l’un volumineux et inférieur, l’autre plus réduit et supérieur. De chaque côté se détache un petit faisceau se rendant aux nervures latérales. A cette hauteur, la coupe ne présente pas encore de tissu fibreux périlibérien, mais une deuxième poche à mucilage a pris naissance. Un peu plus loin, la disposition est celle de la nervure ; l’anneau de tissu de soutien est de nouveau entièrement sclérifié ; plusieurs faisceaux péridesmiques ont repris leur rang et le nombre des poches à mucilage est redevenu ce qu’il était avant le renflement.
Telles sont les intéressantes transformations histologiques subies par les diverses régions constitutives de l’anatomie du pétiole. Dans les différentes espèces, elles sont du même ordre, c’est ce que l’on constate, par exemple, dans l’espèce sauvage de la Côte d’Ivoire et dans le C. Ballayi, sur lequel a porté plus spécialement l’étude de ces particularités ; la complication est parfois plus grande par suite de l’augmentation du nombre des faisceaux péridesmiques et des variations dans leur répartition et leur forme. Une étude de chacune des espèces de Kolatiers dépasserait le cadre de cet ouvrage et ne présenterait sans doute qu’un intérêt systématique médiocre, nous aurons sans doute l’occasion de la reprendre ailleurs à bref délai.
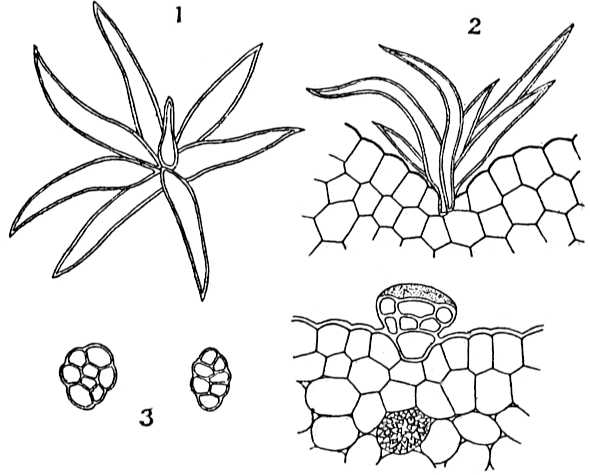
Limbe. — Il est à noter tout d’abord que les jeunes feuilles du bourgeon sont recouvertes d’un tomentum apparent formé de nombreux poils étoilés à la face supérieure, rares à la face inférieure où abondent au contraire les poils glanduleux. Ce revêtement est comparable à ce que l’on observe sur les pièces du périanthe floral (Fig. 19).
Fig. 18. — 1, coupe transversale du limbe de C. Ballayi : cm, cellule à mucilage ; 2, épiderme inférieur vu de face avec stomate sf légèrement enfoncé ; 3, coupe schématique de la nervure médiane vers le tiers supérieur du limbe chez C. acuminata.
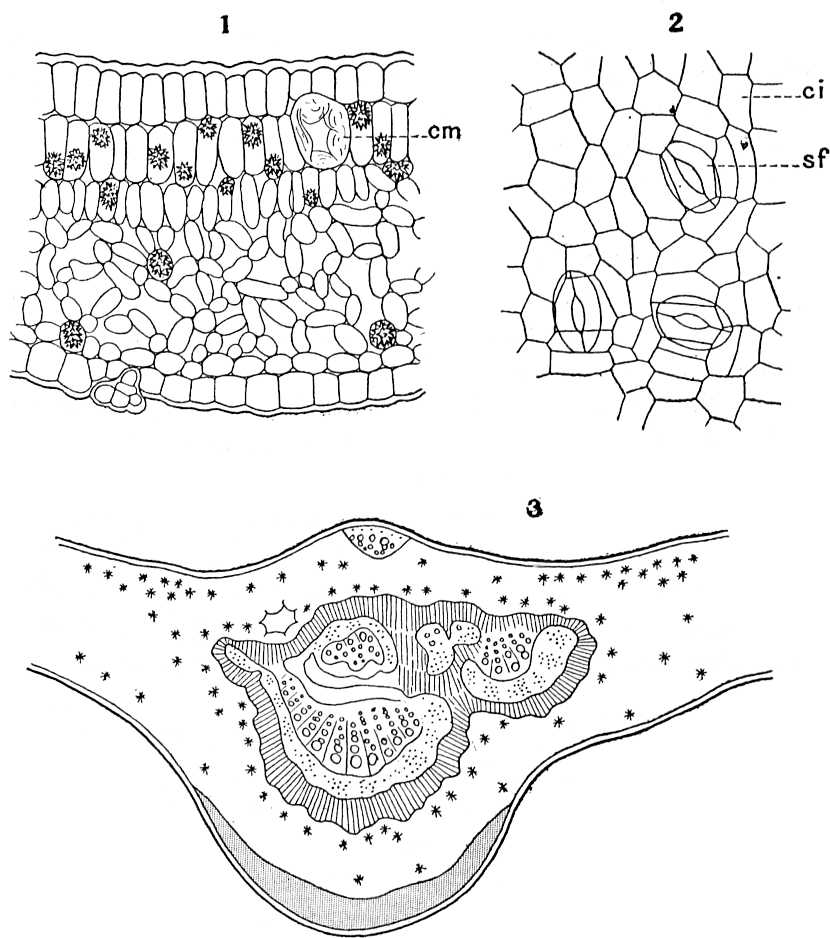
Dans la feuille adulte, le limbe foliaire possède une structure bifaciale très nette. L’épiderme supérieur à cellules allongées dans le sens perpendiculaire à l’axe, assez fortement cuticularisées, est interrompu çà et là par de larges cellules ovoïdes, hypertrophiées remplies de mucilage (cm, Fig. 20) ; il est dépourvu de stomates et de poils.
Le parenchyme chlorophyllien comprend deux assises, dont la première est formée d’éléments allongés assez serrés et la deuxième, au contraire, de cellules à angles plus arrondis et laissant entre elles d’assez larges méats. Le mésophylle lacuneux se compose de cellules rameuses groupées en un tissu lâche qui repose à la face inférieure sur un épiderme à cellules à peu près isodiamétriques, avec parois rectilignes, pourvues d’une cuticule assez mince ; les stomates sont nombreux, enfoncés, avec des cellules annexes dont les plus proches s’orientent dans le sens de l’ostiole (2, Fig. 18) ; les poils glanduleux répartis sans ordre, paraissent cependant plus nombreux en face des nervures. Les plus grosses de ces dernières possèdent encore des faisceaux péridesmiques qui disparaissent dans les plus petites, en même temps que se réduit beaucoup l’arc supérieur libéro-ligneux ; il en est de même des poches à mucilage, mais les cellules remplies de cette substance sont nombreuses et les cellules épidermiques se colorent facilement par l’hématoxyline. Quant à l’oxalate de calcium, il est particulièrement abondant dans le tissu chlorophyllien. Ajoutons enfin que le système fasciculaire est protégé par une bande épaisse de tissu mécanique scléro-fibreux.
ORGANES FLORAUX
Calice. — L’organogénie et la structure histologique des organes floraux ont été particulièrement bien étudiés par Tschirch et Œsterlé[86]. Toutefois, il restait encore à décrire quelques détails d’organisation de la fleur mâle et à fixer certains points du développement du tégument séminal.
L’histologie du verticelle externe (calice) n’a rien de bien saillant. Les épidermes à cuticule très mince présentent d’assez nombreux poils étoilés aux deux faces, surtout en face des nervures, et de rares poils capités. Le mésophylle homogène est rempli de cellules et poches courtes à mucilage et les faisceaux des nervures sont réduits à quelques amas libéro-ligneux sans trace de tissu de soutien. Trois nervures sont toujours très volumineuses et sont fortement apparentes ; entre elles le limbe forme une sinuosité très accentuée. Le système fasciculaire de ces grosses nervures est réduit à un cercle de petites lames vasculaires avec îlots criblés correspondants et sans lignification du parenchyme. Il n’existe point non plus de tissu mécanique périlibérien.
Fig. 19. — 1 et 2, poils étoilés du calice et d’une feuille prise sur un bourgeon ; 3, poils glanduleux vus de face ; 4, poils glanduleux vus de profil.
La structure de l’appareil sexuel est un peu variable suivant que l’on s’adresse aux fleurs mâles ou aux fleurs femelles. Dans les échantillons que nous avons examinés, ces fleurs ne présentent, en réalité, d’autre différence qu’un avortement plus ou moins complet des étamines ou des carpelles, suivant que la fleur donnera ou non des fruits (1, 2, Fig. 24).
Une coupe transversale de la colonne staminale d’une fleur mâle se présente comme un disque, composé de 5 pièces, rayonnant régulièrement autour d’une colonne centrale formée des 5 carpelles réduits. Chaque pièce staminale est divisée plus ou moins profondément en deux loges renfermant chacune 2 sacs polliniques (thèques) (4, Fig. 24).
La coupe longitudinale montre que l’anthère supérieure est reliée à l’anthère inférieure par une masse parenchymateuse (connectif), dépassant à peine la surface de l’organe, et de l’examen de coupes en série il semble que l’on puisse conclure au groupement de ces anthères au nombre de 4 par groupe staminal.
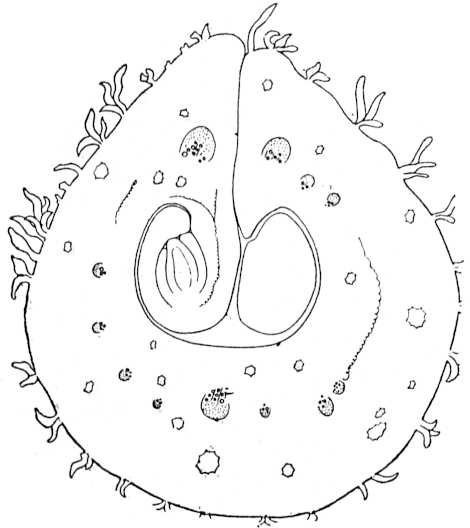
Fig. 20. — Schéma de la coupe transversale de l’ovaire de C nitida.
Il s’ensuit que l’androcée pourrait en somme être considéré comme composé de 5 étamines bifurquées, dont chaque ramification porterait 2 anthères superposées à déhiscence longitudinale.
Dans les fleurs femelles, les anthères persistent, mais sont le plus souvent de dimension très réduite. Quant au pollen, il est presque toujours petit, formé de grains d’apparence ridée et il peut même manquer dans les loges plus ou moins avortées des anthères de la rangée inférieure. De plus, le groupement par 4 est d’ordinaire très apparent : les anthères, au lieu d’être parallèles, se rapprochent plus ou moins en forme d’X.
La coupe demi-schématique (2, Fig. 24), montre un ovaire à carpelles volumineux avec ovales assez nombreux et au-dessous, des anthères groupées et de volume réduit.
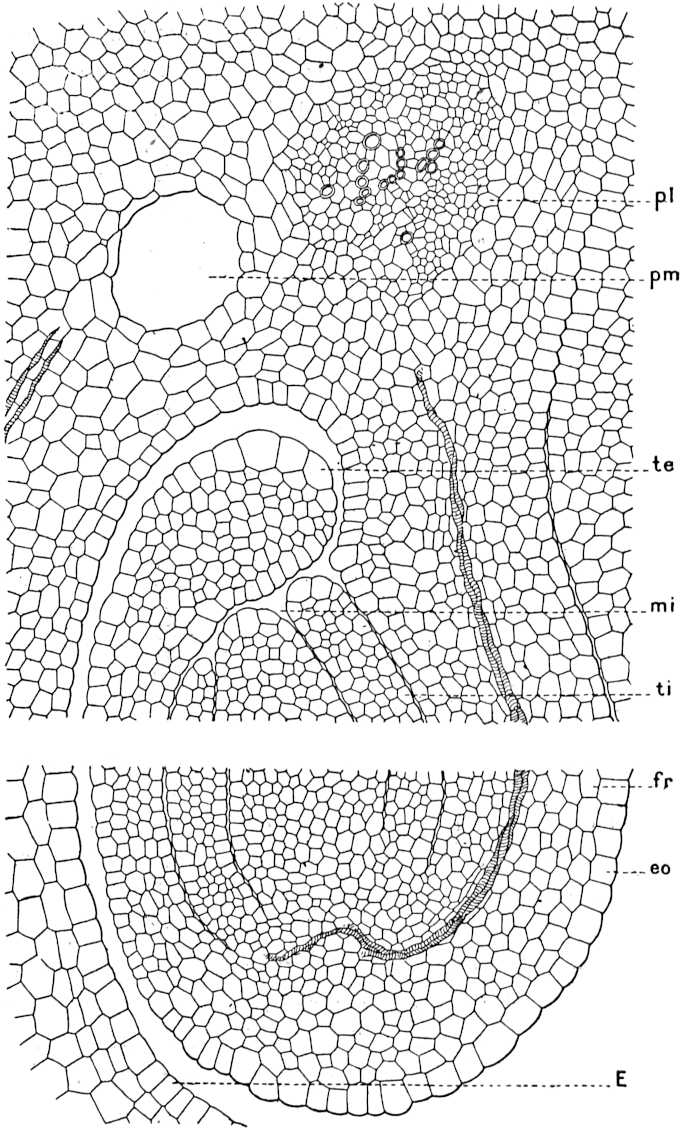
Fig. 21. — Coupe d’un ovule et du placenta ; pl, zone placentaire avec poche à mucilage ; pm, poche à mucilage ; te, ti, téguments ovulaires ; mi, micropyle ; eo, épiderme de l’ovule ; E, épiderme interne de l’ovaire. G = 120 d. environ.
L’axe de l’inflorescence est occupé par une longue poche sécrétrice formée de cellules larges, hypertrophiées et fusionnées en un organe continu de formation lysigène.
L’épiderme externe de tous ces organes est couvert de nombreux poils étoilés.
Ovaire. — L’ovaire est composé généralement de 5 carpelles indépendants régulièrement rangés autour de l’axe et surmontés chacun d’un stigmate épais s’insérant le long de la ligne de soudure de la feuille carpellaire. Ces lames stigmatiques, recourbées sur l’ovaire, disparaissent de bonne heure.
La coupe transversale d’un jeune ovaire montre un épiderme à cuticule mince, couvert de poils tecteurs ressemblant à ceux du calice et formés de cellules en général très allongées, onduleuses et groupées par 3 à 8 en massifs étoilés (Fig. 20). Le tissu du carpelle est parenchymateux, homogène et parcouru par une rangée de faisceaux conducteurs, dont trois plus volumineux, correspondant à la nervure dorsale et à la région placentaire ; on y trouve également quelques poches à mucilage. L’épiderme interne est normal. La soudure des bords carpellaires est intime et les cellules des deux épidermes restent accolées, même dans la suite du développement.
Les ovules, anatropes, bitégumentés, naissent sur un mamelon placentaire développé normalement sur la ligne de bordure des bords carpellaires et sont insérés perpendiculairement sur 2 rangs, les raphés dos à dos et en alternance assez régulière.
Le tégument interne ne recouvre pas entièrement le nucelle ; dans la région micropylaire ; une assez large surface de ce tissu n’est protégée que par le tégument externe, plus épais et même encore renflé à cet endroit (Fig. 21).
Les faisceaux conducteurs du raphé viennent s’épanouir à la chalaze pour envoyer les ramifications dans tout le tégument.
Quant le fruit mûrit, la paroi ovarienne s’épaissit considérablement, reste charnue et il s’y développe de vastes poches à mucilage, quelques-unes visibles à l’œil nu, plusieurs devenant souvent confluentes (Fig. 20). Quant à l’endocarpe, il ne se sclérifie point et bon nombre de ses cellules se transforment en poils capités ne formant pas toutefois de revêtement tomenteux, apparent ; ces poils sont de forme identique à ceux de l’épiderme inférieur des feuilles ou des pétioles antérieurement décrits. Ces poils ne sont pas indiqués sur les figures données par Zohlenhofer[87] et par Planchon et Collin[88].
Fig. 22. — Portion du tégument de la graine de Cola nitida. — te, ti, téguments externe et interne ; nuc, alb, tissus en voie de résorption qui formeront la pellicule papyracée enveloppant l’embryon. G = 160 d.
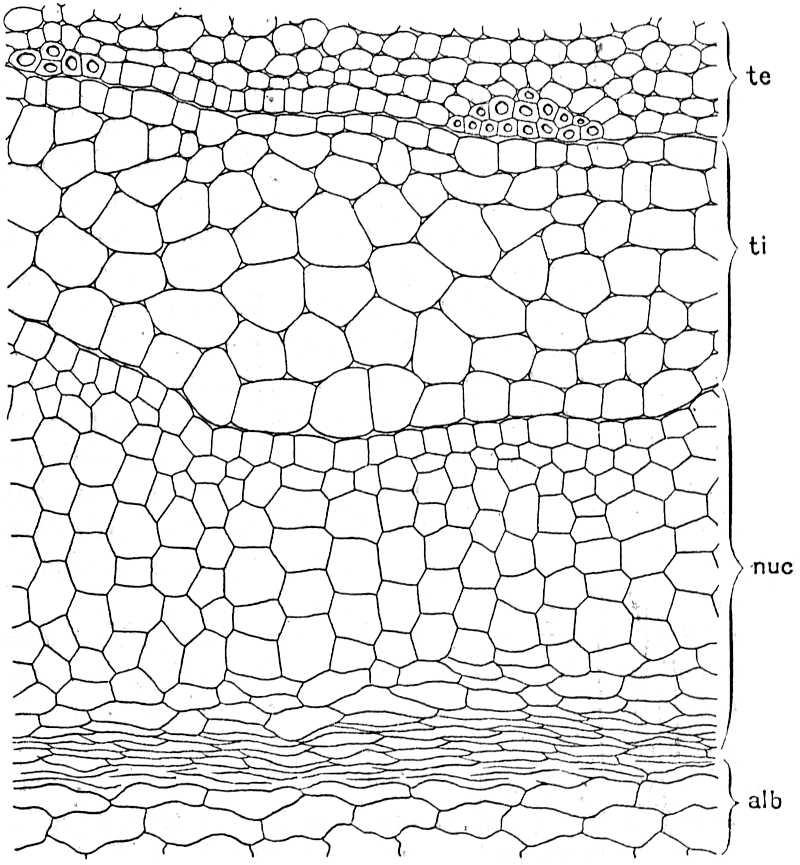
Graine. — Une très jeune graine ne mesurant encore que quelques millimètres de diamètre se montre recouverte d’un tégument charnu assez épais, avec faisceaux libéro-ligneux et poches à mucilage et enveloppant entièrement la graine. Il est ici extrêmement difficile de déterminer même à cet âge, la part qui revient dans cette enveloppe séminale aux deux téguments et MM. Tschirch et Œsterlé ont déjà attiré l’attention sur ce point.
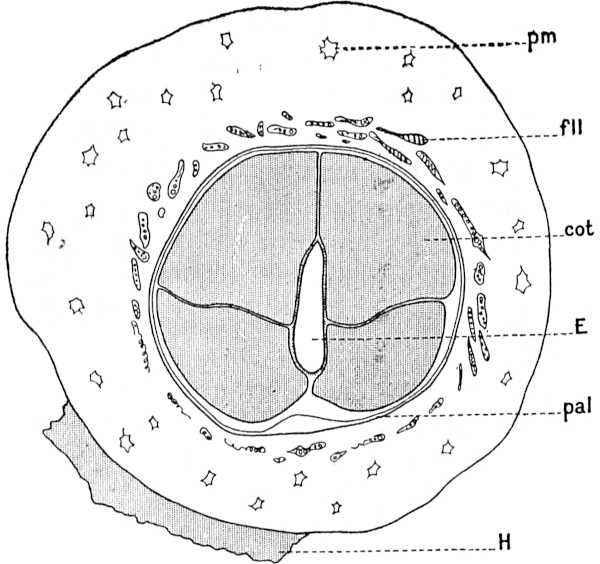
Fig. 23. — Coupe transversale d’une jeune graine de C. nitida, passant au-dessus du point d’insertion des cotylédons ; pm, poche à mucilage ; fll, faisceaux libéro-ligneux ; cot, cotylédon ; E, embryon ; H, hile.
L’examen de nombreuses préparations faites sur des graines à des âges différents nous permet de corroborer l’opinion de ces observateurs au sujet de la disparition rapide par résorption directe du tégument interne.
Toutefois, nous croyons pouvoir affirmer que ce tégument interne est représenté dans les jeunes fruits par des fragments de tissu imprégné d’une matière colorante brune, visible à l’œil nu quand on sépare avec soin l’enveloppe externe charnue, de la membrane translucide incolore qui recouvre immédiatement les cotylédons (10, Fig. 24).
La coupe ci-contre (Fig. 22), montre en effet que le tégument externe se termine par une assise épidermique qui, par endroits, se sclérifie et donne même jusqu’à 3 épaisseurs de cellules scléreuses. Dans les espaces situés entre ces plages sclérifiées, les cellules de ce tégument sont intimement soudées à celles du tissu sous-jacent et il reste une lame de tissu parenchymateux qu’on ne saurait rapporter à autre chose qu’au tégument interne.
Très rapidement, ce dernier se résorbe, sauf en certains endroits, correspondant généralement aux plages scléreuses, où les cellules qui le composent épaississent quelque peu leurs parois, s’imprègnent de matière colorante brune : c’est ainsi que se constituent ces écailles roussâtres, dont nous avons parlé. Ce sont ces cellules qu’a également figurées Tschirch (5, Fig. 35 et 37, Pl. 80 b). L’épiderme du parenchyme nucellaire (nuc, Fig. 22), est indiqué seulement par la disposition régulière de ses éléments et les granulations nombreuses qu’ils renferment ; il se termine à son tour par une zone de cellules écrasées, puis par quelques autres de forme encore bien déterminées, qu’il faut sans doute rapporter à l’albumen[89].
Chez les graines âgées, l’enveloppe séminale externe, blanchâtre, parenchymateuse, s’épaissit sans changer de caractère et se sépare facilement de la tunique interne toujours très mince qui enveloppe intimement l’embryon, auquel elle n’est cependant pas soudée. Cette tunique représente les restes des tissus nutritifs, nucelle et albumen.
La partie comestible, connue sous le nom de noix ou semence de Kola dans le commerce, est donc uniquement constituée par un très petit embryon pourvu de deux ou plus de deux cotylédons relativement énormes.
Même dans le Kola à deux cotylédons seulement, ceux-ci présentent une fente basale souvent très accentuée.
C’est pourquoi, si l’on fait une coupe transversale dans un plan perpendiculaire à l’embryon, dans la région de la radicule, on trouve alors, dans le C. nitida, 4 fragments cotylédonaires séparés (Fig. 23).
L’examen d’une germination montre que les feuilles cotylédonaires d’abord sessiles, ne tardent pas à développer leur pétiole (13, Fig. 24) et la fente basale se prolonge précisément jusqu’au point d’insertion de ce dernier. La feuille cotylédonaire présente ainsi l’aspect d’une feuille cordée ou plutôt hastée.
Aug. Chevalier et Ém. Perrot. Les Kolatiers.
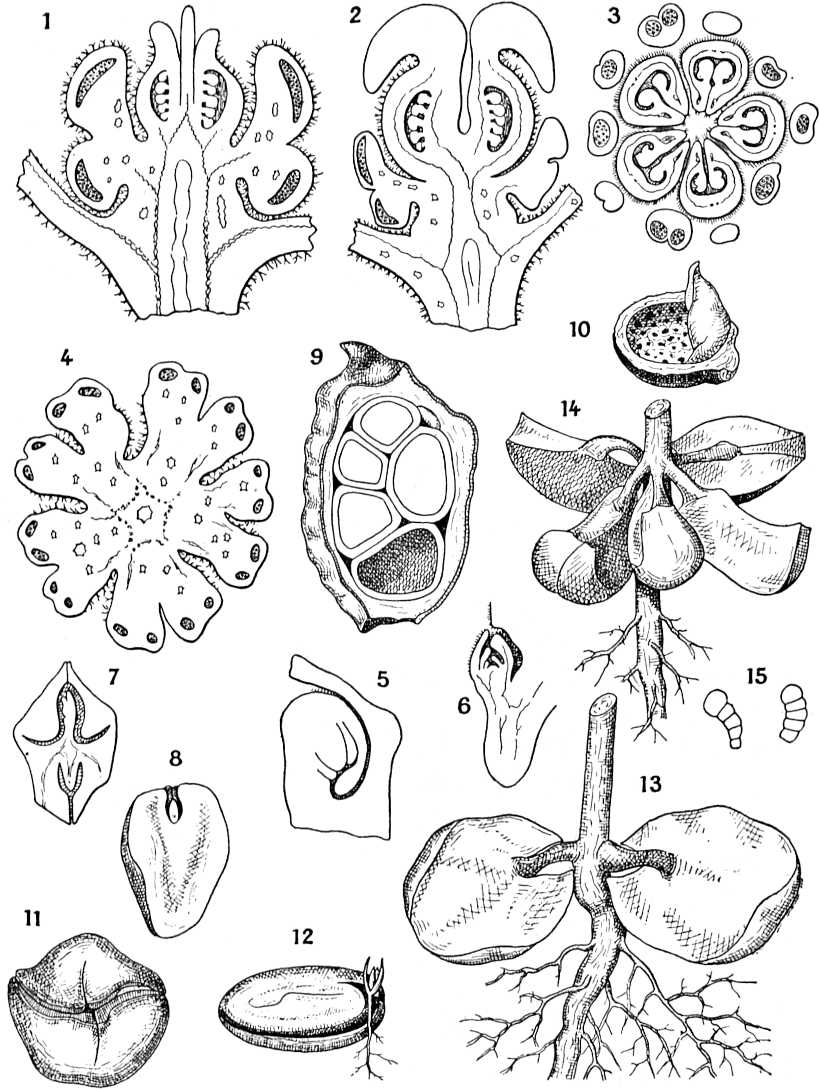
Fig. 24. — Fleur, fruits et graine de Kola ; les numéros 2, 3, 5, 6, 7, 8, 10, 11, 12 d’après Tschirch, les autres d’après des dessins originaux ; 1, coupe longitudinale de la fleur mâle ; 2, et 3, fleur femelle ; 4, coupe schématique transversale dans la partie-supérieure de la colonne staminale d’une fleur mâle ; 5, ovule ; 6, 7, embryon privé de ses cotylédons ; 8, un cotylédon avec son embryon ; 9, follicule ouvert montrant les graines coupées, l’embryon de l’une d’entre elles a été enlevé ; 10, jeune graine : la membrane papyracée interne du tégument a été enlevée pour montrer les écailles brunes restes du tégument interne appliqués au tégument externe épais ; 11, graine privée de ses téguments ; 12, id. en germination ; 13, jeune plantule de Cola nitida ; 14, C. acuminata ; 15, poils glanduleux de l’épiderme embryonnaire.
Le long des fentes, le tissu extérieur du cotylédon se subérifie et ce fait a été étudié particulièrement par Hartwich[90]. Les cellules parenchymenteuses de cet organe sont gorgées de substances de réserve et surtout d’amidon. L’épiderme de l’embryon est garni de poils étoilés et porte aussi d’assez nombreux poils sécréteurs unisériés, analogues à ceux que Mitscherlich a signalés le premier sur l’embryon du Cacao (15, Fig. 24).
Chez le Cola Ballayi, ainsi que chez C. acuminata et C. verticillata, les cotylédons sont nombreux, ou mieux fragmentés et chaque fragment, de forme très irrégulière, est pourvu de son pétiole. Dans ce cas, la disposition hastée est disparue ; il n’y a plus de fente basale, mais le pétiole s’insère toujours vers le 1/3 de la longueur du fragment cotylédonaire (14, fig. 24).
Dans le Kola à 2 cotylédons, nous avons pu observer plusieurs fois la formation de 3 feuilles cotylédonnaires.
Il ne serait pas téméraire de voir, dans cette disposition à la fragmentation chez le cotylédon, une disposition spéciale tendant à donner un verticille, et il faudrait alors admettre que la disposition verticillée des feuilles chez les Kolatiers est un caractère ancestral.
CHAPITRE VII.
Révision des anciennes espèces de la section Eucola d’après les types conservés dans les Herbiers.
En exposant, au Chapitre III, l’histoire de la découverte des plus anciennes espèces de Cola et en présentant un résumé ou une traduction des descriptions botaniques consacrées à ces espèces par leurs auteurs, il est apparu qu’il n’était pas toujours possible à l’aide de ces seuls documents de dire quelles plantes avaient eu en vue les premiers descripteurs. Il nous a donc semblé indispensable d’examiner en détail non seulement les descriptions originales publiées, mais aussi chaque fois que cela était possible les spécimens-types à l’aide desquels ces descriptions furent élaborées. Nous avons été ainsi amenés à étudier les matériaux relatifs aux Cola de la section Eucola conservés dans les principaux herbiers d’Europe.
Au Muséum de Paris, l’Herbier général, l’Herbier de Lamarck, l’Herbier de Jussieu, l’Herbier du Gabon formé par Pierre, nous ont fourni de précieux documents. Dans les serres même du Muséum, nous avons trouvé les jeunes plantes encore vivantes pour lesquelles Maxime Cornu a créé l’appellation Cola Ballayi. A l’Herbier des Jardins royaux de Kew, nous avons passé en revue les échantillons étudiés autrefois par Masters pour la Flora of tropical Africa et les annotations inédites récentes de M. le Dr Stapf, annotations qui nous ont été très aimablement communiquées. Ce dernier botaniste a bien voulu aussi nous envoyer des renseignements sur les Cola de Palisot de Beauvois et de Georg Don conservés au British Museum.
M. le professeur A. Engler, directeur du Muséum botanique de Dahlem-Steglitz (Berlin), a eu aussi l’obligeance de nous envoyer en communication les types des espèces récemment créées par les botanistes de cet établissement, ce qui nous a permis de voir qu’elles étaient synonymes d’espèces déjà connues.
Que M. J. Briquet, directeur de l’Herbier de Genève et son assistant M. Hochreutiner veuillent bien agréer nos remerciements pour l’empressement qu’ils ont mis à nous confier les précieux types de Ventenat et de Palisot de Beauvois conservés dans l’Herbier Delessert, propriété de la ville de Genève.
Enfin nous devons aussi une particulière gratitude à M. le Professeur E. Warming, de Copenhague, qui nous a communiqué, par l’intermédiaire de M. Guignard, de Paris, le type du Sterculia verticillata de Schumacher, conservé à l’Herbier de l’Université de Copenhague.
Presque toujours les matériaux qui ont servi aux descriptions originales sont extrêmement incomplets et parfois en mauvais état. En outre, les organes les plus importants pour distinguer les espèces du genre Cola, c’est-à-dire les fruits développés et les graines, font presque constamment défaut dans les collections. Mais la très grande quantité de matériaux en bon état que nous avons recueillis dans les diverses régions de l’Afrique tropicale, nous ont permis très souvent de différencier les diverses espèces de Kolatiers par le seul examen des feuilles. C’est pourquoi nous avons pu, néanmoins, faire l’identification précise de la plupart des types anciens.
Il nous a semblé utile de publier à la fin de cet ouvrage un atlas photographique des types les plus intéressants, afin de permettre au lecteur d’examiner lui-même les documents sur lesquels ont porté nos études.
TYPES DES ESPÈCES DE VENTENAT.
1o Sterculia nitida Vent. — L’auteur signale que cette espèce est cultivée à l’île Maurice ; de beaux spécimens lui ont été envoyés par Michaux. Ce collecteur, connu surtout par son exploration des forêts de l’Amérique du Nord, visita en effet l’île Maurice. Il faisait partie de l’Expédition Baudin envoyée à la Nouvelle-Hollande en 1901. Michaux séjourna 6 mois à Maurice et mourut à Madagascar fin 1901[91].
a) La plante de Michaux manque dans les Herbiers de Paris, mais il existe dans l’Herbier Ventenat, à Genève, un échantillon très incomplet (Planche I), portant l’étiquette suivante de l’écriture de Ventenat :
Les feuilles sont 2 fois plus longues dans l’herb. de Mr. De La Mark laurifolia à emprunter pour figurer sous le no 572 Isle de France. Michaux. Herbier de Ventenat.
Il n’est pas douteux que c’est là le type du Sterculia nitida Vent. ; la provenance et le nom du collecteur correspondent à ceux mentionnés dans le Jardin de la Malmaison.
D’après le nom porté sur l’étiquette, il semble que Ventenat ait voulu nommer la plante Sterculia laurifolia. Dans sa publication, il a changé le nom spécifique en « nitida », et c’est ce nom publié qui doit être maintenu.
Bien que l’échantillon en mauvais état soit une extrémité de rameau stérile réduite à 5 feuilles, l’inférieure portant une gemmule à son aisselle, il est possible de reconnaître, d’après la forme, la nervation et la consistance des feuilles, que ce rameau appartient à l’espèce produisant les noix comestibles à 2 cotylédons, nommée plus tard Cola vera par K. Schumann.
C’est d’ailleurs cette espèce qui est cultivée aujourd’hui encore dans les îles de l’Océan Indien, notamment à Java (Tschirch).
b) L’échantillon de l’herbier de Lamarck, à feuilles deux fois plus longues, auquel il est fait allusion sur l’étiquette précédente, est probablement celui dont nous publions la photographie (Planche II).
Il est étiqueté comme provenant des Indes Orientales, mais on sait qu’on désignait sous ce nom tous les pays tropicaux situés à l’est de l’Afrique, par opposition à l’appelation « Indes Occidentales », qu’on appliquait à l’Amérique tropicale et spécialement à l’archipel des Antilles.
Sur une petite étiquette qui semble être de l’écriture de Lamarck, on lit :
Arbor foliis alternis Indes orient. S.
Cette petite étiquette est fixée sur une autre beaucoup plus grande portant les inscriptions suivantes en trois écritures différentes :
1o Gynandria decandria- Helicteres ? Pentagyna, cal. nullus, corolla quinquefida, nectar. nulla, fructus ?
2o Sterculia.
3o C’est le collier du Sénégal, le fruit est curieux, mais ne se mange pas ».
Sterculia seul paraît avoir été écrit par Lamarck.
Ce spécimen de l’Herbier Lamarck en parfait état pour l’étude est une extrémité de rameau munie de 5 feuilles et portant à l’aisselle de la feuille inférieure une grappe de fleurs toutes mâles. Il paraît en effet bien identique à celui de l’Herbier Ventenat et il cadre également avec la description de cet auteur. Dans les deux cas, les feuilles sont bien lancéolées-oblongues acuminées ; les inférieures ont un pétiole qui mesure de 5 à 6 cm. et les supérieures sont presque sessiles ; le limbe atteint 13 cm. à 22 cm. de long sur 4 cm. à 8 cm. de largeur. La fleur est de petite taille. Les lobes du calice sont étalés en étoile, glabrescents en dedans, nettement tomenteux en dessous. L’androcée est une petite cupule (urcéole) subsessile.
En somme, cet échantillon est tout à fait identique à notre no 17.740 (Pl. XII), récolté dans la forêt de la Côte d’Ivoire, à fleurs aussi toutes mâles et appartenant indubitablement au groupe des bons Kolas à 2 cotylédons.
Conformément aux règles de la nomenclature, l’appellation Cola nitida (Vent.) A. Chev. devra donc être substituée à l’appellation Cola vera K. Schum.
c) L’Herbier général du Muséum renferme un troisième échantillon (Pl. III), non étiqueté Sterculia nitida, mais tellement semblable à celui de l’Herbier de Lamarck, qu’il est probable que les deux échantillons ont été recueillis sur le même arbre et le même jour.
Le spécimen dont il s’agit est accompagné d’une étiquette très instructive qui nous renseigne sur la provenance et sur un caractère biologique important. Elle est ainsi libellée :
Bois de Sagaye vulgo Indigènes de l’Ile de France. Mâle et femelle sur des pieds séparés Sterculia.
Les quatre premières lignes semblent être de l’écriture de Commerson.
Sterculia est probablement de la main de Laurent de Jussieu.
Enfin l’étiquette du Muséum porte en impression :
Ile de France
Commerson.
Sur laquelle H. Baillon a ajouté :
Cola acuminata R. Br. Ngourou senegalensum.
Le rameau présente à son extrémité 5 feuilles très rapprochées, mais alternes, portant à leurs aisselles des cymes courtes et denses de fleurs mâles. Les feuilles sont brièvement pétiolées, le pétiole mesurant de 10 à 25 mm. au plus. Le limbe de texture assez coriace est lancéolé-oblong, acuminé et mesure de 11 à 15 c. de longueur sur 3 c. 5 à 5 c. 5 de largeur ; la base est assez fortement cunéiforme et l’acumen relativement court. La face supérieure de la feuille est un peu luisante et l’inférieure d’un brun-mat finement réticulée montre 7 à 9 paires de nervures secondaires. Inflorescences roussâtres, à rachis très tomenteux. Calice rotacé de 15 à 17 mm. de diamètre à l’état sec, à 5 lobes oblongs-triangulaires, de 6 à 7 mm. de long, très tomenteux et roussâtres au dehors, beaucoup moins au dedans, principalement dans leur extrémité supérieure.
Androcée ayant la forme d’une petite cupule fortement concave à l’état sec.
2o Sterculia grandiflora Vent. — Le « Jardin de la Malmaison » indique cette espèce a) à l’Isle de France, d’après l’Herb. de Jussieu, b) dans les Indes orientales, d’après l’Herb. de Lamarck.
a) Echantillon de l’Herbier de Jussieu (Pl. IV). — Le spécimen auquel Ventenat fait allusion existe en effet dans l’Herbier Laurent de Jussieu ; une petite étiquette écrite probablement par Ventenat porte seulement le mot « grandiflora ». Une seconde écrite de la main de Laurent de Jussieu est ainsi libellée :
Sterculia grandiflora V. Ile de France. — Herb. de Commerson. — Sans étiquette
« grandiflora » à la suite de Sterculia a été ajouté plus tard avec une autre encre, sans aucun doute après l’étude de Ventenat.
L’échantillon qui accompagne cette étiquette est un rameau vigoureux, muni de 5 feuilles rapprochées, en partie détachées et portant près de son extrémité une inflorescence dont les fleurs fort grandes sont en partie mangées par les insectes.
Ainsi que l’indique la description, les feuilles sont bien ovales acuminées. Le pétiole mesure, de 3cm à 5cm de long ; le limbe est très coriace, fortement réticulé, arrondi ou à peine cunéiforme à la base, longuement acuminé au sommet, présentant 7 ou 8 paires de nervures secondaires. Inflorescence à rachis très robuste, ramifié en panicule pauciflore, presque glabre dans la partie inférieure, parsemé dans la partie supérieure de poils étoilés roussâtres. Fleurs toutes hermaphrodites de 2 à 3cm. environ de diamètre, calice divisé en 5 lobes pourvus de poils roussâtres étoilés sur les deux faces, mais à poils plus clairsemés sur la face interne. Ovaire gros, subsphérique, formé de 5 carpelles pubescents portant chacune un petit sillon médian roussâtre ; stigmates assez longs, aigus, bien détachés de l’ovaire vers leur extrémité.
b) Echantillons de l’Herbier de Lamarck (Pl. V). — Outre le Cola rattaché au C. nitida, dont nous avons parlé plus haut, il existe dans l’Herbier Lamarck un autre échantillon accompagné de deux petites étiquettes. L’une porte l’inscription :
Sterculia grandiflora. J. de Malmaison.
l’autre :
Sterculia ?
Cette dernière inscription est l’écriture de Lamarck lui-même. L’échantillon est aussi une extrémité de rameau portant 7 feuilles et à 2 cm. 5 de l’extrémité une cyme axillaire peu rameuse, formée de quelques grandes fleurs hermaphrodites, la plupart détachées et renfermées dans un sachet. Ces fleurs présentent les mêmes caractères que celles du spécimen de l’Herbier de Jussieu.
Les feuilles par contre sont moins ovales et plus nettement oblongues, bien cunéiformes à la base ; le limbe mesure 20 cm. à 25 cm. de long sur 6 cm. 5 à 7 cm. 5 de large. Malgré ces légères différences, ce rameau qui provient aussi probablement des récoltes de Commerson, s’identifie avec l’échantillon a) mentionné ci-dessus.
L’examen attentif que nous avons fait de ces deux spécimens nous a convaincu que non seulement ils devaient être rapportés au même type spécifique mais encore ils rentrent dans le même groupe que les spécimens décrits par Ventenat sous le nom de Sterculia nitida. La nervation et la consistance des feuilles sont très semblables, quant aux différences dans la forme et la dimension des feuilles, dans la dimension des fleurs, on observe parfois ces différences groupées sur un même arbre. La Planche XI (no 19.849 de notre herbier) représente un échantillon de cette même espèce que nous avons recueilli dans la forêt de la Côte d’Ivoire et qui porte à la partie inférieure deux racèmes de grandes fleurs hermaphrodites semblables à celle de Sterculia grandiflora et plus haut, sur le même rameau, deux groupes de fleurs mâles beaucoup plus petites et ayant tous les caractères, ainsi que les feuilles du Sterculia nitida.
Cette planche montre d’une manière irréfutable que les deux espèces n’en forment qu’une et comme l’appellation de Sterculia nitida précède l’autre, c’est celle que nous conserverons en nous conformant aux règles de la nomenclature.
C’est pour cette raison que nous avons adopté le nom de Cola nitida (Vent.) A. Chev. pour désigner l’espèce produisant les noix à deux cotylédons.
Type du Sterculia acuminata P. Beauv.
L’explorateur de la flore de Benin récolta en 1789, plusieurs échantillons de son Sterculia acuminata qui se trouvent aujourd’hui dans l’Herbier de Genève et au British Museum. Les caractères que présentent ces échantillons authentiques ne concordent pas complètement avec ceux qui sont attribuées à l’espèce dans la flore du royaume d’Ovare et de Bénin, ainsi que nous l’avons montré dans un Chapitre précédent.
Fig. 25. — Sterculia acuminata, Pal. Beauv. Type de l’Herbier du British Museum. Androcées des fleurs mâles et poils étoilés (Croquis communiqué par M. le Dr Stapf).
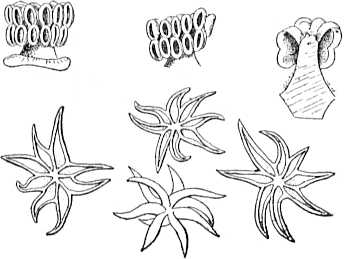
Nous reproduisons (fig. 25) le croquis que nous a aimablement communiqué M. Stapf, croquis représentant les principaux organes du Sterculia acuminata type du British Museum. Nous avons examiné nous-même les fleurs du spécimen du Muséum de Genève, contenu dans l’Herbier Delessert (Planche VI), fixé sur une feuille de papier portant la mention :
Herbier Palisot de Beauvois.
C’est ce dernier échantillon que l’on doit considérer comme le type le plus authentique. Du reste, il paraît bien identique à celui de Londres que nous connaissons d’après les dessins de Stapf.
Ce type de Genève porte l’étiquette suivante :
Sterculia nitida. Oware en Afrique, Envoyé par M. de Beauvois, 1789, no XIV... 5. sans nom.
Au milieu est épinglé un fragment de papier avec l’inscription :
« nitida »
qui parait avoir été écrit par Ventenat. Sur l’étiquette même, Sterculia et nitida sont d’écritures différentes, de sorte que le nom spécifique n’a été ajouté qu’après la détermination de Ventenat.
Il ne faut pas s’étonner si Ventenat ou un autre botaniste de son époque a cru reconnaître, dans la plante du Bénin, l’espèce de l’Ile Maurice qui venait d’être décrite. Les matériaux diffèrent par des caractères très difficiles à discerner, mais il est cependant possible, avec quelque attention, de différencier le rameau avec fleurs mâles de l’Herbier Lamarck rapporté à Sterculia nitida par Ventenat et les échantillons recueillis par Palisot de Beauvois.
Dans l’Herbier Delessert l’échantillon que nous avons photographié (Planche VI), se compose d’une branche portant deux rameaux repliés et munis chacun de six feuilles environ. Celles-ci sont peu coriaces, assez régulièrement écartées et non groupées en rosette terminale ; pétiole grèle, dressé, long de 1 cm. à 6 cm. Limbe oblong-lancéolé, long de 11 cm. à 18 cm. sur 3 cm. à 6 cm. de large, cunéiforme à la base, terminé au sommet par un acumen assez long et grèle ; 7 à 8 paires de nervures secondaires ; nervilles formant des réticules peu apparentes ; surface supérieure très luisante. Inflorescences courtes, pauciflores, à fleurs de petite dimension ; les fleurs mâles et les fleurs hermaphrodites entremêlées. Calice urcéolé-campanuliforme profondément divisé en 5 ou 6 lobes, parsemés de poils étoilés en dedans et en dehors, avec une marge blanchâtre épaissie. Fleurs mâles à androcée brièvement stipité, le bord supérieur des loges des anthères faisant un peu saillie au-dessus du disque un peu pubescent.
En rapprochant la plante que nous venons de décrire de notre no 19.715 (Planche XIV), recueilli à la Côte d’Ivoire où elle est cultivée par les Kroumen (Bas-Cavally), on verra l’analogie frappante qui existe entre les deux exsiccata et le no 19.715 appartient indubitablement au Cola produisant des noix à plus de deux cotylédons.
En résumé, le Kolatier découvert par Palisot de Beauvois au Bénin est une espèce bien distincte du Kolatier cultivé à l’Ile Maurice au XVIIIe siècle. Le premier est le véritable Cola acuminata (Pal. Beauv.) Schott et Endl.[92].
Le second devra être nommé désormais, comme nous l’avons déjà dit, Cola nitida (Vent.) A. Chev. = Cola vera K. Schum.
Type du Sterculia verticillata Thonning in Schumacher.
Nous avons pu examiner deux spécimens récoltés par Thonning à la Gold-Coast, dans le district d’Aquapim. Tous les deux sont certainement authentiques, mais stériles et réduits à un ou deux verticilles de feuilles. La description que Schumacher a donnée de cette plante est suivie de la mention T, indiquant que la description a été faite sur place par Thonning, or l’on sait que l’herbier de ce voyageur fut détruit par un incendie lors du bombardement de Christianburg. Il ne reste donc que les spécimens incomplets adressés probablement à Vahl et à Schumacher.
Le premier se trouve dans l’herbier des Jussieu, au Muséum, et porte l’étiquette suivante :
Sterculia verticillata Nonne Sterculia acuminata Beauv. Fl. ow. tab. 24 Misit d. Vahl, 1804 e Guinea
Le second (Planche VII), qu’on peut considérer comme le type, se trouve à Copenhague et provient de l’herbier Schumacher.
Bien qu’ils soient dépourvus de fleurs, ces spécimens se distinguent de tous les Cola connus aujourd’hui encore par la disposition des feuilles verticillées par 4. Dans chacun des deux herbiers, on ne trouve qu’un court rameau réduit à deux verticilles de feuilles, en partie détachées dans l’herbier des Jussieu, mais dont on retrouve les insertions.
Par suite de la disposition verticillée des feuilles, l’extrémité des rameaux est subquadrangulaire avec des sillons (à l’état sec) entre chaque angle sur le dernier entre-nœud. Le bourgeon terminal porte quelques poils blanchâtres et présente de petites stipules.
Les pétioles longs de 2 cm. à 6 cm. sont grêles et étalés. Le limbe est mince, lancéolé ou lancéolé-oblong, long de 12 cm. à 20 cm. sur 4 cm. 5 de large, cunéiforme à la base, terminé au sommet par un acumen court (de 5 à 7 mm. de long), mais très étroit ; texture papyracée-coriace ; nervures secondaires 6 ou 8 paires régulièrement courbées en arceaux ; surface supérieure d’un vert mat, l’inférieure brune (à l’état sec), fortement réticulée.
Par les caractères que nous venons d’énoncer, la plante en question s’identifie complètement avec un Cola à feuilles verticillées, recueilli en fleurs et en fruit dans ces dernières années par Johnson, aux environs d’Aburi et nommé dans l’Herbier de Kew Cola Johnsoni Stapf Mss.
Nous avons retrouvé récemment la même plante à l’état spontané, au Dahomey, où elle est connue sous le nom de Kola abidan ou Kola d’eau.
Cette espèce sera désignée désormais sous le nom de Cola verticillata (Thonn. in Schum.) Stapf.
Type du Cola macrocarpa G. Don.
Ce type existerait au British Museum, mais nous ne l’avons pas observé. D’après Stapf, il provient de San Thomé. Nous connaissons dans cette île que nous avons parcourue Cola acuminata et Cola sphærocarpa A. Chev. Or, il ne peut s’agir de cette dernière puisque Don attribue à son espèce des graines également connues en Guinée sous le nom de Kola et jouissant des mêmes qualités que le Kola ordinaire.
Il est donc très probable que la plante de ce botaniste doit être rapportée à Cola acuminata. Il la distingue surtout parce qu’elle a 4 à 6 graines, alors que Palisot de Beauvois avait, par erreur, attribué à son espèce des follicules monospermes.
M. Rendle, directeur du Département botanique au British Museum, nous écrit que « l’herbier du British renferme divers spécimens de Cola provenant de G. Don et qu’il est difficile de dire quel est celui qui doit être regardé comme type de son espèce. »
Type du Syphoniopsis monoica Karst.
Nous ne connaissons pas le type et nous ignorons s’il se trouve dans quelque herbier européen. C’est Baillon qui le premier a rattaché le Syphoniopsis au Cola acuminata. K. Schumann a maintenu ce rattachement en spécifiant que le Syphoniopsis monoica était identique à la plante de Palisot de Beauvois à plus de deux cotylédons. Cette assertion devra être contrôlée, car nous savons au contraire que c’est ordinairement le Cola nitida à deux cotylédons qui est cultivé dans l’Amérique tropicale et aux Antilles.
Types des Cola du Flora of Tropical Africa.
Ces types existent dans l’Herbier de Kew, où nous les avons examinés. Aucun ne nous intéresse, tout le groupe Eucola étant fondu en une seule espèce Cola acuminata R. Brown.
Type du Cola Ballayi M. Cornu, in Heckel.
Principal collaborateur de Savorgnan de Brazza au Congo depuis 1875, le Docteur Ballay fit parvenir vers 1885 au service des Cultures du Muséum, un lot de noix de Kola, qui furent ensemencées dans les serres de cet établissement. Le Professeur Maxime Cornu constata de profondes différences dans la forme des noix, le mode de germination et la disposition des feuilles sur les jeunes sujets, entre les plantes venant des graines de Kolatiers recueillis au Gabon par Ballay et celles provenant des graines à deux cotylédons reçues de la côte de Guinée, considérées alors comme provenant du Cola acuminata alors que ces noix à deux cotylédons étaient en réalité fournies par le Cola nitida.
Maxime Cornu étiqueta ce nouveau Kolatier des serres du Muséum Cola Ballayi, mais il n’en publia pas la description et le nom serait resté inédit si le Professeur Heckel n’avait décrit et figuré la plante de Cornu[93].
Malheureusement Heckel a confondu deux espèces et la description qu’il donne de Cola Ballayi se rapporte à la fois au Cola Ballayi Cornu in Hort. Mus. et au Cola acuminata P. Beauv. (non Heckel). C’est bien au Cola Ballayi qu’appartiennent les figures 8 et 9 de la monographie de Heckel et la première partie de la description, « Feuilles verticillées à l’état jeune »[94] et aussi la planche II.
Presque tout le reste de la description se rapporte presque certainement au Cola acuminata (P. B.) Schott et Endl. (non Heckel) et il ne faut pas s’en étonner puisque cette espèce donnant aussi des noix à quatre cotylédons est beaucoup plus commune au Gabon que le véritable Cola Ballayi, ce dernier étant surtout répandu dans la région de l’Oubangui. On sait d’autre part que Heckel considérait les noix à deux cotylédons comme fournies par le Cola acuminata et les noix à plus de deux cotylédons comme fournies exclusivement par le Cola Ballayi.
C’est ce qui explique sans doute pourquoi K. Schumann dans sa monographie a décrit une plante du Gabon sous le nom de Cola acuminata var. Ballayi, qui n’est certainement pas le véritable Cola Ballayi Maxime Cornu et qui n’est probablement qu’une forme insignifiante du Cola acuminata.