SYSTEMATIK. (continued 9)
Reading edition
Beide Erscheinungen, die Entstehung der Nebenformen und die Vereinfachung des Lobenbaues lassen sich ungezwungen deuten als Ausdruck für das Bestreben des Ammonitenthieres sich behufs freier Bewegung der Schale zu entledigen, ein Vorgang, der vielleicht durch den Aufenthalt an felsiger Küste befördert wurde. Einen weiteren Beleg für die Richtigkeit dieser Auffassung liefert das Auftreten einer lebenden Cephalopodengruppe, welche den Namen
Octopoda (Achtfüssler)
führt. Hierher gehören fast ausnahmslos unbeschalte, freischwimmende Thiere von gedrungener oder cylindrischer Gestalt. Der Mund (Fig. 547 m) wird von 8, meist ungleich entwickelten, freien oder ganz oder z. Th. durch Lappen verbundenen, Saugnäpfen, nur selten auch Häkchen tragenden Armen umstellt (Fig. 547). Meist sind das erste (dorsale) Armpaar, zuweilen das zweite oder auch beide stärker und länger ausgebildet als die übrigen. Bei einigen Formen ist der Hautlappen, welcher die dorsalen Arme verbindet, in der Mitte tief gespalten. Der Trichter (tr) bildet eine geschlossene Röhre, welche ontogenetisch durch Zusammenwachsen zweier Lappen in der Mittelebene entsteht. Flossen fehlen zumeist. Die Muskulatur zeigt im Vergleich zum lebenden Nautilus folgende Verschiedenheiten: Es ist ein langer, kräftiger, unpaarer Bauchmuskel vorhanden; an Stelle des einen Paares von Schalenmuskeln bei Nautilus haben wir 2 Paare, von denen das bauchständige (»Herabzieher des Trichters«) oft viel stärker entwickelt ist, als das rückenständige. In dem unpaaren muskulösen Nackenband, welches Kopf und Rumpf verbindet, endigen die »Anzieher des Trichters«, wie bei Nautilus. Ein Tintenbeutel ist mehr oder minder stark ausgebildet, fehlt aber zuweilen. Bei einigen Formen findet sich ein knorpeliger oder fleischiger Schliessapparat an der Basis des Trichters. Die meisten Octopoden (Fam. Octopidae) führen eine litorale Lebensweise, die Familie der Philonexidae ist aber ausgesprochen pelagisch.
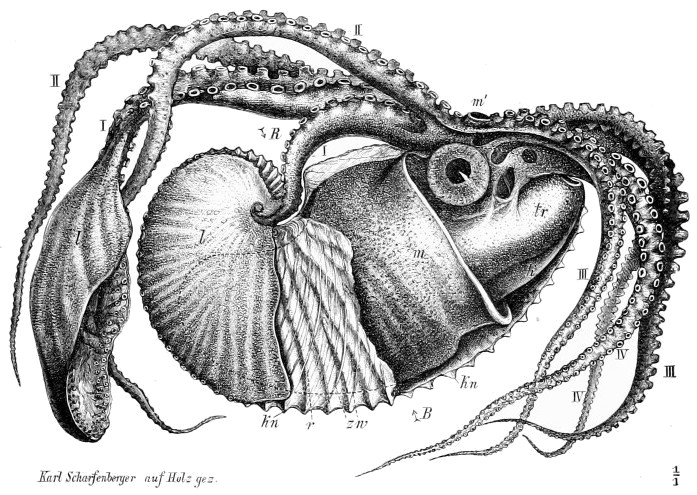
Fig. 547. Argonauta argo L. Lebend. Mittelmeer. Das Weibchen in der z. Th. aufgebrochenen Schale (stark zusammengezogen). R = Rücken-, B = Bauchseite; m = Mantel; tr = Trichter; m’ = Mund; I–IV = die 4 Armpaare, vom Rücken gegen den Bauch zu gezählt. I = das dorsale Armpaar, in einem Spiralausschnitte der Schale liegend, mit seiner lappenartigen Verbreiterung (l) die Schale von hinten her bis zum Vorderrande umfassend. r = Rippen; zw = stärkere Zuwachsstreifen; kn = Aussenknoten der Schale.
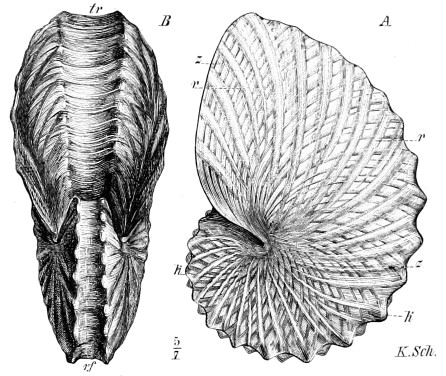
Fig. 548. Argonauta hians Sol. v. Oweni. Lebend. Indischer Ocean. A Schale von der Seite, B gegen die Mündung gesehen. r = Rippen; z = Zuwachsstreifung; k = Aussenknoten; rf = Aussenfurche; tr = Trichterausschnitt.
Die Gesammtform sowie die Organisation und die embryonale Entwickelung der Octopoden machen es sehr wahrscheinlich, dass ihre Ahnen schalentragend waren. Manche Besonderheiten des Thieres fordern zu einem Vergleiche mit dem Ammonitenthier auf. Die 6 Muskelpartien entsprechen den 6 Fundamentalloben der ausgerollten Ammonitenschale (und zwar der unpaare, bauchständige Muskel dem Aussenlobus, die Herabzieher des Trichters den ersten, die sog. Schalenmuskeln den zweiten Seitenloben, das unpaare Nackenband dem Innenlobus. Hierzu kommt noch, dass das Weibchen der Gattung
Argonauta L. (Fig. 547–549) eine äussere Kalkschale besitzt, welche in manchen Merkmalen von der Ammonitenschale abweicht, andererseits aber eine sehr bemerkenswerthe Uebereinstimmung mit derselben erkennen lässt. Die Schale ist exogastrisch spiral in einer Ebene aufgerollt (Fig. 548), entbehrt der Perlmutterauskleidung, der Luftkammern, des Sipho, sowie der Embryonalblase; sie steht mit dem Thiere nicht in fester Verbindung, sondern sie wird nur von den lappenartig verbreiterten Rückenarmen (Fig. 547 I l) festgehalten, welche dieselbe von hinten her bis zum Vorderrande umfassen. Der Schalenanfang ist röhrenförmig-conisch (Fig. 549 A k) oder kapuzenförmig (C), besitzt an seinem äussersten Ende eine grössere (C n) oder kleinere (A n) concave Embryonalfläche, welche bereits bei einem Durchmesser von 1 mm Zuwachsringe zeigt (C n), und ist mit äusserlich sichtbaren Zuwachsstreifen und Rippen bedeckt. Bei weiterem Wachsthum verschwindet die Zuwachsstreifung von der Oberfläche, weil die inzwischen ausgebildeten Rückenarme mit ihren Lappen die Schale umfassen und auf derselben eine äussere Schalenschicht ablagern, welche die Zuwachsstreifung verdeckt, aber noch durchscheinen lässt (Fig. 548 A z). Durch die Thätigkeit der Rückenarme wird die Bildung einer geschlossenen Schalenwand auf dem Rücken unmöglich gemacht; die Schalenmasse häuft sich daselbst an und wird meist zu einer Achsenleiste verdickt (Fig. 549 l), die zuweilen in seitliche Fortsätze (Fig. 549 B f) ausläuft, z. Th. wird sie als Umschlag auf dem vorhergehenden Umgange abgelagert. Bei ungenabelten Schalen liegen zuweilen die Umgänge wie bei den Ammoniten längs einer Naht an einander(Fig. 548 A, B), bei genabelten bildet sich dort wo die Arme austreten, ein Spiralausschnitt (Fig. 547, 549 A), wie er in gleicher Weise, wenn auch weniger tief, am Mundrande von Scaphites (Fig. 546) beobachtet wird. Die Körperoberfläche ist überall muskulös verdickt und das Thier liegt nirgends der Schale dauernd an; daher kommt es weder zur Bildung eines Sipho noch zur Abscheidung von Luftkammern und Perlmuttersubstanz. Aber die Schale bildet und verdickt sich unablässig vom Mantel wie von den Rückenarmen aus, und daher zeigt die Schalensubstanz dieselbe Schichtung wie das Perlmutter. In Folge der bauchwärts übergeneigten Stellung des Thieres in der Schale ist der Trichterausschnitt auf der Aussenseite mehr oder weniger tief.
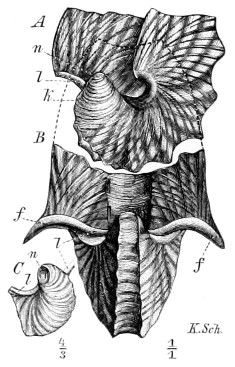
Fig. 549. Argonauta hians Sol. Lebend. Indischer Ocean. A eine junge Schale mit kegelförmigem Schalenanfang (k); n = Embryonalfläche; l = Achsenleiste. B var. gondola Dillw. f = Seitenfortsätze der Spiralleiste (l). C Schalenanfang eines anderen Exemplars, die Anfangscalotte mit der concaven Embryonalfläche (n) zeigend.
Die recenten und fossilen (pliocänen) Argonauta-Schalen lassen sich nach der Art der Berippung und der Gestalt der Schale in 3 Gruppen zerlegen, von denen eine jede gewissen Ammonitenformen der oberen Kreide überraschend ähnlich ist, nämlich:
1) Gruppe der Argonauta hians Sol. (Fig. 548, 549). Schale ungenabelt oder sehr enggenabelt. Spiralausschnitt fehlend oder schwach. Grobe, entfernt stehende, sparsam gespaltene, nach vorn geschwungene Rippen. Nur im Alter entspricht jeder Spaltrippe ein breiter stumpfer Knoten am Aussenrande, sonst ist die Zahl der Spaltrippen grösser als die der Knoten. Aussenseite vertieft oder gerundet. Windungsquerschnitt oval bis trapezförmig. Diese Gruppe besitzt die gleiche Skulptur wie die Hopliten der Kreide aus der Gruppe des H. auritus (vgl. Fig. 541). Pliocän und lebend in den wärmeren Meeren.
A. Sismondai Bell. Pliocän. Piemont.
A. hians Sol. Lebend. In allen wärmeren Meeren. Bildet zahlreiche Varietäten.
2) Gruppe der Argonauta tuberculata Lmk. Schale ungenabelt oder enggenabelt. Zahlreiche, mehrfach gespaltene, ganz oder zum Theil in gerundete Knoten aufgelöste, gerade oder schwach zurückgebogene Rippen. Die abgeplattete oder vertiefte Aussenseite jederseits mit einer Reihe breiter, seitlich zusammengedrückter Knoten besetzt, welche weniger zahlreich sind als die Spaltrippen. Windungsquerschnitt oval.
Scaphites Conradi aus dem ? Eocän Nordamerikas besitzt dieselbe Involution und ganz ähnliche Berippung. Lebend in den wärmeren Regionen des atlantischen und indo-pacifischen Oceans.
A. tuberculata Lmk. (= nodosa Sol.).
3) Gruppe der Argonauta argo L. (Fig. 547). Schale ziemlich weit genabelt. Spiralausschnitt tief. Jede der zahlreichen, geschlängelten, durch wiederholte Spaltung entstandenen Rippen endigt an der schmalen Aussenseite in einem feinen, spitzen Knoten. Windungsquerschnitt sehr hoch, fast dreiseitig. Dieselbe zusammengedrückte Form der Schale und die gleiche Verzierung besitzt die Wohnkammer von Scaphites compressus aus dem oberen Senon Europas. In allen wärmeren Meeren, auch im Mittelmeere.
A. argo L. (Fig. 547).
Die Ammoniten verschwinden in Europa und in anderen Gegenden mit dem Ende der Kreideformation, obgleich noch keine einzige der zur Jurazeit vorhandenen Familien vorher erloschen ist. Im pacifischen Becken scheinen sie noch zur älteren Tertiärzeit vorhanden gewesen zu sein. Die (rasch verschwindende) Schalenanlage des Embryo der Octopoden, sowie ihre Organisation im Allgemeinen machen es im höchsten Grade wahrscheinlich, dass sie von schalentragenden Formen abstammen. Die Vertheilung der Muskulatur, ganz besonders aber die schlagende Uebereinstimmung der 3 Argonauta-Gruppen mit Ammoniten-Gruppen der oberen Kreide lassen kaum noch begründeten Zweifel an dem genetischen Zusammenhange derselben aufkommen. Der Einwurf, dass z. Z. die Verbindungsglieder zwischen Scaphiten bez. Ammoniten und Argonauta aus dem Tertiär noch nicht bekannt sind, träfe, wenn er stichhaltig wäre, in gleicher Weise für andere Thierabtheilungen (Kieselschwämme, Seeigel, Ophiuren, Crinoiden etc.) zu, bei denen vermittelnde Formen in Kreide oder Tertiär noch nicht gefunden sind. Der Schwund der Schale ist in gleicher Weise, wie bei den Octopoden, bei den marinen Nacktschnecken vor sich gegangen. Schalenrudimente, wie die Argonauta-Schale, kommen bei den Heteropoden vor, die Besonderheit der Schalenbildung von Argonauta durch Mantel und Arme gleichzeitig findet ihr Analogon bei Nautilus (p. 349) und rein ostrakale Schalen giebt es auch unter den Muscheln (z. B. Ostrea). Der Verlauf der Zuwachsstreifung auf dem Schalenanfange und die Concavität der Embryonalfläche von Argonauta endlich liefern den unumstösslichen Beweis, dass die Schale schon vor vollendeter Entwickelung der Rückenarme vom Embryo angelegt war.
Die lebenden Octopoden bilden eine Reihe sehr verschieden hoch organisirter Formen. Die Familie der Philonexidae, zu welcher Argonauta gehört, schliesst sich aller Wahrscheinlichkeit nach an die Aegoceratidae an. Die vielfach höher organisirten Octopidae stammen vielleicht von den Lytoceratidae (? und Amaltheidae) ab, während die isolirte hakentragende Gattung Cirroteuthis, wie Funde aus den Solenhofener Kalken beweisen, schon zur Zeit des oberen Jura schalenlos war, also vermuthlich an die triadischen Nebenformen der Latisellati (Ceratitidae) anknüpft.
Eine andere Art der Verkümmerung der Schale, welche z. B. auch bei den terrestrischen Nacktschnecken Platz gegriffen hat, besteht darin, dass der Mantel die Schale umwächst und das Thier sich mehr oder weniger vollständig aus der Schale herauszieht. Dieser Vorgang lässt sich bei der letzten Ordnung der Cephalopoden verfolgen, welche nach der wichtigsten fossilen Gattung (Belemnites) als dritte Ordnung Belemnoidea bezeichnet werden mag.
3. Ordnung Belemnoidea.
Hierher gehört die Mehrzahl der heutigen Cephalopoden. Sie zeichnen sich durch den Besitz zweier Kiemen, 8 gleicher und 2 verlängerter und besonders gestalteter (Fang-) Arme, eines ungespaltenen Trichters, eines Tintenbeutels und flossenartiger Anhänge aus. Die niemals fehlende Schale ist stets ganz oder grösstentheils in den Mantel eingeschlossen. In der Mehrzahl der Fälle bildet die rückenständige Schale ein dünnes, horniges Blatt mit geringen Einlagerungen von kohlensaurem oder phosphorsaurem Kalk, und die ursprünglichen Merkmale der äusseren Schale, wie Scheidewände und Sipho, sind nicht mehr ohne Weiteres zu erkennen. Nur wenige der jetzt lebenden Formen besitzen noch eine gekammerte Schale wie ihre Ahnen im mesozoischen Zeitalter. Wir trennen sie aus Zweckmässigkeitsgründen als Phragmophora von den Chondrophora ab, ohne damit sagen zu wollen, dass diese Eintheilung für alle Formen eine durchaus naturgemässe sei.
Eintheilung der Belemnoidea:
A. Phragmophora. Schale kalkig, meist kegelförmig, gerade, seltener platt oder (endogastrisch) spiral gerollt, gekammert. Trias — Gegenwart.
B. Chondrophora. Schale hornig oder schwach verkalkt, platt, scheinbar ungekammert. Trias — Gegenwart.
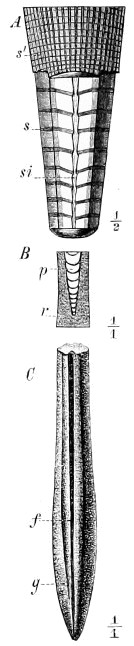
Fig. 550. Schale von Aulacoceras. Karnische Stufe. Salzkammergut. A ein Stück des oberen (vorderen) Theiles der Schale angeschliffen, gegen die Bauchseite gesehen. s’ = Schale (Ostracum); s = Scheidewände; si = Sipho. B ein mittleres Stück der Schale bis zur Mitte durchgeschnitten, das untere Ende des Phragmokons (p) und die umgebende Schalenmasse des Rostrums (r) zeigend. C unterer Theil der Schale (das verdickte Rostrum) mit gekörnter Oberfläche (g) und Seitenfurchen (f).
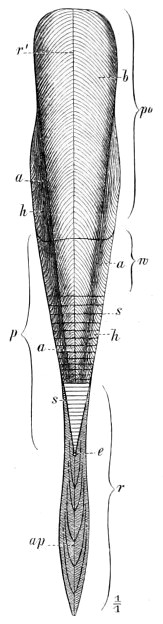
Fig. 551. Ergänzte Schale von Belemnites gegen den Rücken gesehen, im unteren Theile (r) bis zur Mitte aufgeschnitten gedacht. Das keulenförmig verdickte Rostrum (r) umgiebt den unteren Theil des mit einer kugeligen Embryonalblase (e) beginnenden Phragmokons (p); s = Scheidewände desselben (! schwach procöl!); w = Wohnraum des Thieres; po = Proostracum, d. h. die Verlängerung der Schale auf der Rückenseite (auf der Bauchseite fehlend); b = bogenförmige Zuwachslinie desselben; h = Hyperbelstreifung auf den Seiten; a = sog. Asymptotenlinie.
A. Phragmophora.
In der Triasformation finden sich Cephalopodenschalen, welche durch ihre gestreckte Gestalt, durch ihre Kammerung, insbesondere durch den Besitz einer kugeligen Embryonalblase, und die bauchständige Lage des Sipho den ältesten Ammonoideen (Bactrites) sehr ähnlich sind (p. 394), sich von ihnen aber dadurch unterscheiden, dass der hintere Theil der Schalen keulenförmig verdickt ist (Fig. 550 C) und der gekammerte Theil nicht bis an das hintere Ende der Schale reicht (Fig. 550 B p). Diese Schalenverdickung besteht aus ostrakaler Masse; sie wird als Rostrum von dem eigentlichen, nicht verdickten Ostracum und dessen innerer Auskleidung, dem Phragmokon unterschieden. Die Scheidewände stehen in erheblicher Entfernung von einander (Fig. 550 A s), das Rostrum besteht aus schwammiger Kalkmasse, ist äusserlich gekörnelt (Fig. 550 C g) und mit Furchen versehen (C f) — Aulacoceras. Aehnliche Schalen sind im Jura und in der Kreide sehr häufig. Sie differiren aber von den älteren durch viel geringere Stärke des oberen, nicht verdickten (nur sehr selten erhaltenen) Schalentheiles (Fig. 551), der auf der Bauchseite tief ausgeschnitten und nur auf der Rückenseite von dem sog. Proostracum (Fig. 551 po) gebildet wird. Die schwach concaven Scheidewände (s) des Phragmokons (p) stehen sehr gedrängt, das Rostrum ist compact, äusserlich glatt (r) oder mit Gefässeindrücken versehen. Die secundäre Verdickung des hinteren Schalenendes, sowie die Gefässeindrücke des Rostrums deuten darauf hin, dass die Schalen vom Mantel umschlossen waren. Abdrücke des ganzen Thieres (Fig. 552) bestätigen diese Voraussetzung: sie zeigen, dass derartige Schalen im Mantel des Thieres (m) eingeschlossen waren, und dass die Thiere (?) 10 Arme und einen Tintenbeutel (t) besassen — Belemnites. Schon bei manchen jurassischen Formen war die Schale stark reducirt (Fig. 552 p, r). Die tertiären zeigen uns, wie das Rostrum allmählich verschwindet und der übrige Theil der Schale entweder eine platte schildförmige Gestalt annimmt (Fig. 565) oder sich spiral einrollt (Fig. 564). Alle diese, offenbar genetisch sehr enge mit einander verknüpften Formen fassen wir als
Fam. Belemnitidae
zusammen. Die wichtigsten Vertreter derselben lassen sich folgendermaassen classificiren:
A.Schale mit fadenförmigem Sipho, Luftkammern hinter dem Thier gelegen. Querschnitt des Phragmokons mehr oder weniger kreisrund.
a.Phragmokon gerade oder schwach gekrümmt, Rostrum stark entwickelt.
α.Scheidewände des Phragmokons entfernt stehend. Rostrum schwammig oder compact, aber nicht strahlig gebaut.1. Unterfam. Aulacoceratinae (Fig. 549).
β.Scheidewände des Phragmokons gedrängt stehend. Rostrum fast immer compact und strahlig.2. Unterfam. Belemnitinae (Fig. 552–561).
b.Phragmokon gerade, Rostrum sehr schwach entwickelt.3. Unterfam. Belemnoteuthinae (Fig. 552).
c.Phragmokon mehr oder minder stark endogastrisch eingerollt, Rostrum schwach entwickelt oder fehlend.4. Unterfam. Spirulinae (Fig. 562, 563).
B.Schale mit weiter Siphonalhöhlung. Luftkammer neben dem Thier gelegen. Querschnitt des Phragmokons von vorn nach hinten abgeplattet.5. Unterfam. Sepiinae (Fig. 564).
Die Abtheilungen sind nicht scharf von einander geschieden; wir können uns den muthmaasslichen Zusammenhang folgendermaassen vorstellen:
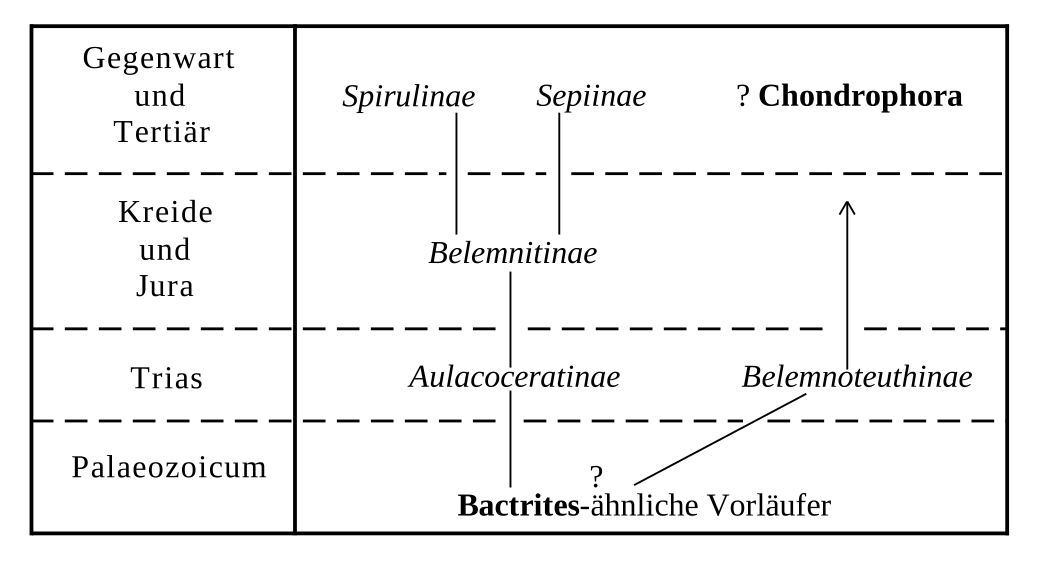
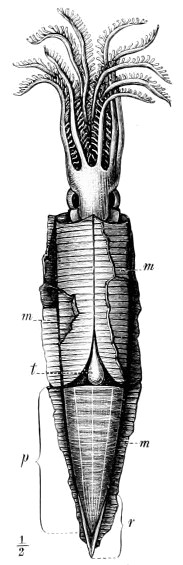
Fig. 552. Restauration eines im Abdruck erhaltenen Belemnitenthieres (Belemnoteuthis antiqua Pearce). Oberes Callovien, Wiltshire. Die mit kurzem Rostrum (r) versehene Schale (p) liegt im Mantel (m) eingeschlossen; t = Tintenbeutel. Der Kopf mit 10 Armen.
1. Unterfam. Aulacoceratinae.
Hierher gehören 2 Gattungen, welche in der alpinen Trias und z. Th. auch noch im Lias verbreitet sind.
Aulacoceras Hau. (Fig. 550). Der gekammerte Theil (A) gleicht einem Orthoceras mit randständigem Sipho, aber Septaldüten fehlen, statt dessen sind kurze Septalkragen vorhanden. Der Sipho ist hinter den Scheidewänden (A s) erweitert; er scheidet eine kalkige Hülle ab (A si). Die Wand der Schale (Conothek — s’) meist mit Längs- und Querskulptur. Das selten mit dem Phragmokon im Zusammenhange gefundene Rostrum (Scheide — C) ist kurz und von keulenförmiger Gestalt, meist mit tiefen Seitenfurchen (f) versehen, auf der Bauch- und Rückenseite abgeplattet und oberflächlich gekörnelt (g). Die Scheide besteht aus schwammiger Kalkmasse. In der alpinen Trias, häufig nur in der karnischen Stufe des Salzkammerguts.
Au. reticulatum Hau. sp. (Fig. 550 A). Karnische Stufe. Salzkammergut.
Au. inducens Braun sp. Karnische Stufe. Südalpen.
Atractites Gue. Phragmokon und Scheide nicht selten im Zusammenhange erhalten. Conothek mit Asymptotenlinie und bogenförmigen Rückenlinien (siehe Belemnites), im Uebrigen glatt. Scheide oft sehr gross, cylindrisch oder unregelmässig keulenförmig, ohne seitliche Furchen. Häufig in der Trias der Alpen, der Balkanhalbinsel und der arktischen Regionen; desgl. im Lias der Alpen und des Apennin; auch in Peru.
A. secundus Mojs. sp. Oberer Muschelkalk. Nordalpen. Norische Stufe. Südalpen.
A. alveolaris Qu. sp. Norische Stufe. Nordalpen.
A. Ausseanus Mojs. sp. Karnische Stufe. Nord- und Südalpen.
A. liasicus Gue. Unterer Lias (α). Nordalpen.
A. orthoceropsis Men. sp. Unterer und mittlerer Lias. Alpen. Apennin.
Nahe verwandte Formen, durch einen sehr langen Phragmokon ausgezeichnet, finden sich auch im mitteleuropäischen Lias:
Xiphoteuthis elongata d. l. B. sp. Mittlerer Lias. England, Lothringen, Elsass, Schwaben.
2. Unterfam. Belemnitinae.
Wenn auch vollständige Uebergangsreihen noch nicht bekannt sind, so kann es doch nicht zweifelhaft sein, dass die Belemniten aus den Aulacoceratinen hervorgegangen sind. Sie erscheinen zum ersten Male im unteren Lias und verschwinden fast ganz mit dem Ende der Kreideformation. Vereinzelte, durch starke Schalenreduction ausgezeichnete Formen kennt man aus dem älteren Tertiär.
Die meist allein erhaltene Scheide (Fig. 553 r) ist von keulen- oder fingerförmiger Gestalt; sie besteht zumeist aus compacter, strahliger, selten z. Th. schwammiger, durch Bitumen schwach braun gefärbter Calcitmasse. Die Krystalle stehen senkrecht und radial zu einer scharf markirten Linie (ap) — Scheitel oder Apicallinie —, welche am hinteren Ende des Phragmokons beginnt und die Scheide bis zur hinteren Spitze durchzieht. Dieselbe liegt stets etwas excentrisch und zwar der Bauchseite genähert. Die Oberfläche desselben ist glatt oder mit Furchen oder verzweigten Gefässeindrücken versehen. Man hat zu unterscheiden:
Furchen der Mittelebene. Dieselben sind am vorderen oder Alveolar-Ende am tiefsten und verflachen sich nach hinten hin. Die Furche liegt entweder nur auf der Bauchseite (Gastrocoeli — Fig. 556 B, C) oder nur auf der Rückenseite (Notocoeli — Fig. 559), sehr selten beiderseits gleichzeitig. Eine auf die Spitze der Scheide beschränkte Bauchfurche ist nicht selten (Subquadrati).
Seitliche Furchen, meist viel weniger ausgeprägt, finden sich häufig; sie liegen stets der Rückenseite genähert — Dorsolateralfurchen (Fig. 555 f). Bald sind sie auf die Spitze beschränkt (Spitzenfurchen — Fig. 554 Af), bald beginnen sie am Vorderrande und enden nach hinten schwächer (Seitenfurchen — Fig. 555 f).
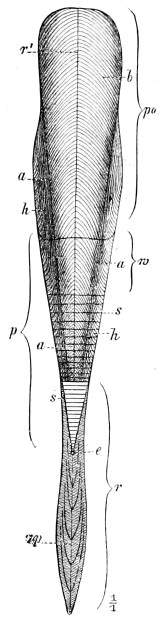
Fig. 553. Ergänzte Belemnitenschale gegen den Rücken gesehen (der untere Theil bis zur Mitte aufgeschnitten gedacht). r = Rostrum; ap = Apicallinie; p = Phragmokon; s = die (hier nicht procöl gezeichneten) Scheidewände desselben; e = Embryonalblase; po = Proostracum; r = Rückenlinie; b = die bogenförmig convexe Streifung des Rückenfeldes; a = Asymptotenlinie; h = Hyperbolarstreifen; w = das hintere Ende der Wohnkammer.
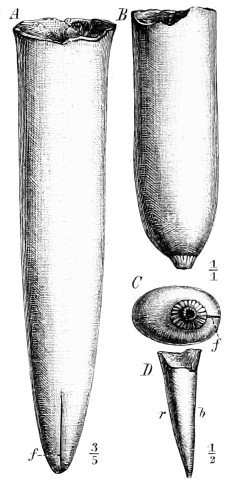
Fig. 554. Belemnites paxillosus Schl. Mittlerer Lias (δ). Vieux-Pont, Calvados. Scheide von der Seite gesehen. f = Dorsolateralfurche. B, C B. irregularis Schl. Oberer Lias (ε). Heiningen, Württemberg. B von der Seite; C von unten. f = auf die Spitze beschränkte Bauchfurche. D B. acutus Mill. Scheide von der Seite. r = Rücken-, b = Bauchseite.
Die Grösse und Gestalt der Scheiden sind mannigfachen Schwankungen unterworfen; die grössten werden etwa 1 m lang. In einer trichterförmig vertieften, stets etwas excentrischen Höhlung des vorderen Theiles des Rostrums steckt die eigentliche Schale (Fig. 553), deren ostrakale Hülle als Conothek, deren aus Perlmuttersubstanz bestehende Kammerung als Phragmokon (p) bezeichnet wird. Die dorsale Verlängerung der Schale heisst Proostracum (po). Die Oberfläche der Conothek zeigt eine Zuwachsstreifung, welche auf dem dreieckigen, nach vorn sich verbreitenden Dorsalfelde bogenförmig (nach vorn convex) verläuft (b). Zu beiden Seiten setzt diese Streifung an einer Längslinie ab, der sog. Asymptotenlinie (a). Jenseits derselben (auf der Seite der Schale) läuft die Streifung bogenförmig bauch- und abwärts (sog. Hyperbolarfelder — h), um auf der Bauchseite in horizontale Linien überzugehen. Dieser Verlauf der Zuwachsstreifung zeigt, dass die Schale nur auf der Rückenseite normal wuchs, während das Wachsthum auf der Bauchseite zurückgedrängt war; der obere Theil der Schale war vom Bauche her vom Thiere zum grossen Theil umwachsen, während das Rückenschild wahrscheinlich noch nicht ganz in den Mantel eingeschlossen war. Die Luftkammern des Phragmokons sind niedrig, die Septa (s) schwach procöl (in der Zeichnung irrthümlicher Weise ganz flach). Der Sipho liegt hart an der Bauchseite, eine kurze Septaldüte schliesst ihn ein. Die Scheidewandlinie zeigt keinerlei Lobenbildung, was darauf schliessen lässt, dass die Muskeln sich aus der Schale gelöst und von aussen an derselben angeheftet hatten.
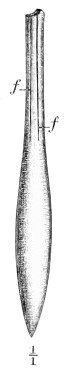
Fig. 555. Belemnites clavatus Schl. Mittlerer Lias. England. Scheide von der Rückenseite. f, f = die beiden Dorsolateral-(Seiten-)Furchen.
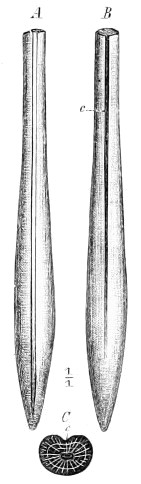
Fig. 556. Belemnites hastatus Blv. Oxford. Dives, Calvados. A Scheide von der Seite, die Dorsolateralfurche zeigend. B dieselbe von der Bauchseite, die Bauchfurche (c) zeigend. C Querschnitt. c = Bauchfurche.
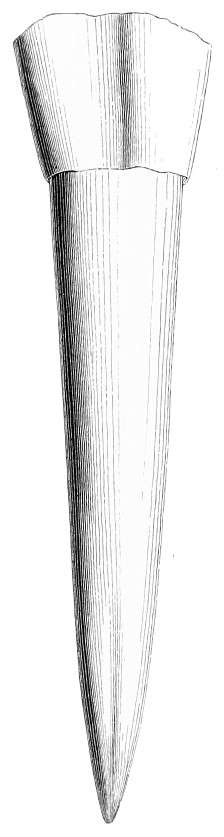
Fig. 557. Belemnites giganteus Schl. Mittlerer Dogger. Württemberg. Scheide von der Seite gesehen. Das Alveolarende ist verdrückt. ½.
Man unterscheidet gewöhnlich folgende 2 Gattungen:
Belemnites List. (Fig. 554–562). Alveolarende der Scheide ohne Spalt. Unterer Lias — Cenoman. Diese im Jura besonders häufige Gattung zerfällt in folgende Abtheilungen:
A. Sect. Acoeli Br. Eine am Alveolarende beginnende Bauch- oder Rückenfurche fehlt; zuweilen eine kurze Bauchfurche an der Spitze (Fig. 554, 555, 557). Jura — Untere Kreide.
1. Gruppe: Acuti. Scheide kurz, pflockförmig, sich rasch zuspitzend. Alveole tief, stark excentrisch (Fig. 554 D). Unterer Lias — Oberer Dogger.
B. acutus Mill. (Fig. 554 D). Unterer Lias (Oberregion von α und Lias β). Mitteleuropa.
B. brevis Blv. Unterer Dogger (Opalinus-Sch.). Mitteleuropa.
B. breviformis Ziet. Mittlerer Lias. Mitteleuropa.
B. Gingensis Opp. Mittlerer Dogger. Mitteleuropa.
2. Gruppe: Paxillosi. Scheide verlängert, verkehrt kegelförmig bis keulenförmig. Alveole mehr oder weniger central. Meist Spitzenfurchen vorhanden (Fig. 554). Mittlerer und oberer Lias.
B. paxillosus Schl. (Fig. 554 A). Sehr häufig im mittleren Lias. Mitteleuropa.
B. elongatus Mill. Mittlerer Lias (γ). Mitteleuropa.
B. umbilicatus Blv.}Mittlerer Lias. Mitteleuropa.
B. compressus Stahl.
B. ventroplanus Voltz.
3. Gruppe: Irregulares. Scheide fingerförmig, unten abgestutzt, seitlich abgeplattet. Andeutung einer Bauchfurche an der Spitze (Fig. 554 B, C). Mittlerer und oberer Lias.
B. Lotharingicus Stnmn. Mittlerer Lias (δ). Lothringen, Franken.
B. irregularis Schl. (= digitalis) (Fig. 554 B, C). Oberer Lias (ε). Mitteleuropa.
4. Gruppe: Rhenani. Scheide verlängert, schlank, meist sehr gross. Mehrere Spitzenfurchen vorhanden (Fig. 557). Vom mittleren Lias an, hauptsächlich im unteren und mittleren Dogger.
B. Rhenanus Opp. unterer Dogger (Opalinus-Sch.). Mitteleuropa.
B. spinatus Qu. Unterer Dogger (Murchisonae-Sch.). Mitteleuropa.
B. giganteus Schl. (Fig. 557). Mittlerer, seltener oberer Dogger. Mitteleuropa, Südamerika.
5. Gruppe: Tripartiti. Schlanke, oft fast cylindrische Scheiden mit 3 (oder mehr) deutlichen Furchen an der Spitze. Die Dorsolateralfurchen reichen oft weit an der Scheide hinauf. Structur der Scheide oft locker. Oberer Lias.
B. tripartitus Schl. Oberer Lias.}Mitteleuropa.
B. acuarius Schl. Oberer Lias (ε).
B. longisulcatus Voltz. Oberer Lias (ζ).
6. Gruppe: Clavati. Scheide keulenförmig, nach oben verjüngt, mit schwachen Seitenfurchen am oberen Ende (Fig. 555). Mittlerer Lias — Oxford.
B. clavatus Schl. (Fig. 555). Mittlerer, seltener oberer Lias.}Mitteleuropa.
B. subclavatus Voltz. Unterer Dogger (Opalinus-Sch.).
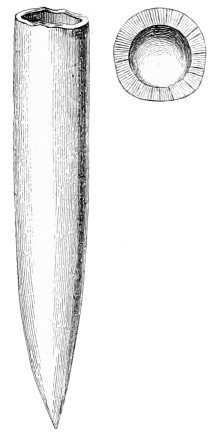
Fig. 558. Belemnites Brunsvicensis Stromb. Urgon. Umgegend von Braunschweig. Scheide von der Seite und (oben rechts) von oben gesehen, um die Abplattung der Bauchseite (unten) zu zeigen. ¹⁄₁.
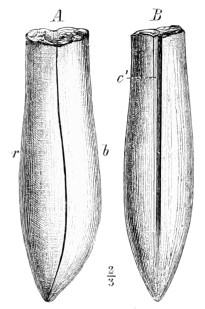
Fig. 559. Belemnites latus Bl. Unterste Kreide (Sch. d. Bel. latus). Chardavon, Bss. Alpes. A Scheide von der Seite. r = Rücken-, b = Bauchseite. B dieselbe von der Rückenseite. c’ = Rückenfurche.
B. Sect. Gastrocoeli d’Orb. Eine am Alveolarende beginnende Bauchfurche vorhanden oder Bauchseite abgeplattet oder vertieft (Fig. 558, 559). Oberer Lias — Cenoman.
7. Gruppe: Canaliculati. Bauchfurche deutlich. Dorsolaterallinien fehlen. Mittlerer Dogger — Untere Kreide.
B. canaliculatus Schl. Mittlerer und oberer Dogger. Mitteleuropa.
B. Blainvillei Voltz. Mittlerer Dogger. England, Frankreich.
B. semicanaliculatus Bl. Aptien. Mittel- und Südeuropa.
8. Gruppe: Hastati. Ausser der (zuweilen sehr kurzen) Bauchfurche gedoppelte Dorsolaterallinien vorhanden. Scheide verkehrt kegel-, meist aber keulenförmig (Fig. 556). Oberer Dogger — Cenoman.
B. Beyrichi Opp.}Oberer Dogger. Mitteleuropa.
B. Württembergicus Opp.
B. subhastatus Ziet. Unteres Callovien.}Mitteleuropa.
B. latisulcatus d’Orb. Mittleres Callovien.
B. hastatus Mtf. (Fig. 556). Oberes Callovien und unteres Oxford.
B. semisulcatus Mnstr. Oberer Malm.}Mittel- und Südeuropa.
B. pistilliformis Bl. Neocom.
B. minimus List. Oberer Gault.}Mitteleuropa.
B. ultimus d’Orb. Cenoman.
9. Gruppe: Subquadrati. Bauchfurche nur am hinteren Ende deutlich oder fehlend, aber Bauchseite abgeplattet. Von den beiden vorigen Gruppen nicht scharf geschieden (Fig. 558). Callovien — Aptien.
B. Puzosi d’Orb. Callovien. Mitteleuropa, Russland.
B. Beaumonti d’Orb.}Callovien und unteres Oxford. Mitteleuropa, Russland.
B. Panderi d’Orb.
B. absolutus Fisch. Kimmeridge (untere Wolga-St.). Russland.
B. Russiensis d’Orb.}Oberster Malm (ob. Wolga-St.). Russland.
B. corpulentus Nik.
B. subquadratus Rö. Neocom. Mitteleuropa.
B. Brunsvicensis Stromb. (Fig. 558). Urgon. Norddeutschland.
C. Sect. Notocoeli. Eine am Alveolarende beginnende Rückenfurche vorhanden. Scheide meist platt (Fig. 559). Oberer Malm — Neocom.
10. Gruppe: Conophori. Scheide rund oder schwach abgeplattet. Dorsolaterallinien fehlend oder schwach.
B. conophorus Opp. Leitfossil für das Tithon in den Karpathen, Alpen und im Apennin.
B. conicus Blv. Neocom. Alpen.
11. Gruppe: Dilatati. Scheide abgeplattet oder kantig. Dorsolaterallinien deutlich (Fig. 559).
B. tithonicus Opp.}Tithon. Alpen.
B. ensifer Opp.
B. latus Blv. (Fig. 559). Unteres Neocom. Westalpen.
B. dilatatus Blv.}Mittelneocom. Westalpen.
B. polygonius Blv.
Belemnitella d’Orb. (Fig. 560–562). Scheide keulenförmig bis cylindrisch, unten meist mit Spitze, am Alveolarende mit kurzem, bauchständigem Siphonalspalt (Fig. 561 sp). Oberfläche in der Regel gekörnelt (Fig. 561) oder mit Gefässeindrücken (Fig. 562 A e) versehen. Phragmokon meist mit Rückenkiel, die Alveole mit entsprechender Furche (Fig. 562 C af). Dorsolaterallinie vorhanden. Diese Gattung ersetzt Belemnites in der oberen Kreide, wo nur noch 1 echter Belemnit vorkommt; besonders häufig im Senon (»Belemnitellenkreide«).
A. Actinocamax Mill. Scheide gekörnelt, seltener glatt. Das Alveolarende derselben leicht zerstörbar und deshalb oft kegelförmig (Fig. 560, 561) zugespitzt. Cenoman — Unteres Senon.
B. plena Blv. sp. (Fig. 560). Grenzschichten von Cenoman und Turon in Mitteleuropa.
B. Westphalica Schlüt. sp. Unteres Senon (Emscher). Norddeutschland, Südschweden.
B. vera Mill. sp. Unteres Senon (Emscher). Mitteleuropa.
B. quadrata Blv. sp. (Fig. 561). Obere Abtheilung des unteren Senon (»Quadratenkreide«). Mitteleuropa.
B. subventricosa Wahlb. sp. Unteres Senon. Südschweden. Als Diluvialgeschiebe in Norddeutschland.
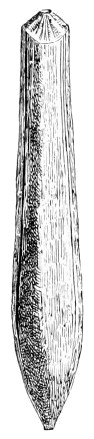
Fig. 560. Belemnitella (Actinocamax) plena Blv. sf. Unterstes Turon (Mytiloides-Pläner). Essen a. d. Ruhr. Scheide gegen den Rücken gesehen. Das Alveolarende ist stumpfkegelig abgeblättert.
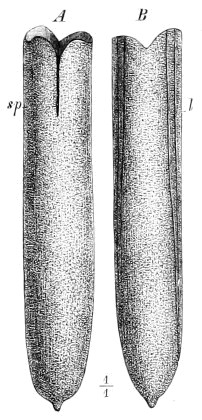
Fig. 561. Belemnitella (Actinocamax) quadrata Blv. sp. Unteres Senon (Quadratenkreide). Schweichelt b. Peine, Hannover. A Scheide von der Bauchseite. sp = Siphonalspalt. B dieselbe von der Rückenseite. l = Dorsolaterallinie.
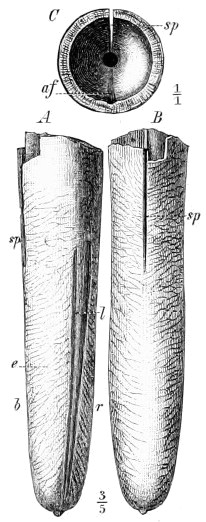
Fig. 562. Belemnitella mucronata Schl. sp. Oberes Senon (Mucronatenkreide). Coesfeld, Westfalen. A Scheide von der Seite. b = Bauch-, r = Rückenseite; sp = Siphonalspalt; l = Dorsolaterallinien. B dieselbe von der Bauchseite. C dieselbe von oben. sp = Siphonalspalt; af = Rückenfurche der Alveole.
B. Belemnitella s. str. Scheide mit verzweigten Gefässeindrücken. Alveole mit Rückenfurche (Fig. 562 C af). Senon und Danien.
B. mucronata Schl. sp. (Fig. 562 A–C). Weit verbreitet in Europa, auch in Nordamerika. Selten im unteren Senon, sehr häufig im oberen (»Mucronatenkreide«); ausserdem in der dänischen Stufe in Frankreich und Belgien.
Man kennt noch 4 weitere, eocäne Gattungen, die alle durch verhältnissmässig kleine und zarte Schalen sich auszeichnen.
3. Unterfam. Belemnoteuthinae.
Diese den Belemniten in wesentlichen Merkmale ähnliche, schon in der Trias vorhandene Gruppe scheint einen älteren Zweig zu repräsentiren, in welchem die Verinnerlichung und Reduction der Schale bereits früher eingetreten ist. Das Rostrum (Fig. 551 r) bildet nur einen dünnen Ueberzug des Phragmokons. Als Beispiel dieser aus Trias und Jura in seltenen Vertretern bekannten Gruppe mag die Gattung
Belemnoteuthis Pearce (Fig. 551) erwähnt werden, deren wohlerhaltene Abdrücke im englischen Callovien zur Restauration der obigen Figur Veranlassung gegeben haben.
4. Unterfam. Spirulinae.
Im älteren Miocän findet sich eine Gattung, deren Schale durch die beginnende Einrollung des Phragmokons ein Bindeglied zwischen manchen Belemniten mit gekrümmter Alveole und der bekannten lebenden Gattung Spirula darstellt.
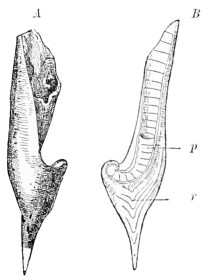
Fig. 563. Spirulirostra Bellardi d’Orb. Untermiocän. Turin. A Schale von der Seite, B dieselbe in der Mittelebene durchgeschnitten. p = der bauchwärts gekrümmte Phragmokon; r = Rostrum.
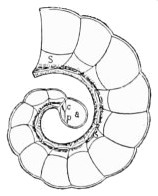
Fig. 564. Spirula Peronii Lmk. Lebend. Erste Windung der Schale, in der Mittelebene durchgeschnitten, den erweiterten Sipho (s), dessen blindsackförmige Endigung (b) in der Embryonalblase (a) und seine Anheftung durch den Prosipho (p) zeigend.
Spirulirostra d’Orb. (Fig. 563). Der allein bekannte, untere Theil der Schale besteht aus einem dreieckigen, sich rasch verjüngenden Rostrum (B r), welches den bauchwärts gekrümmten Phragmokon (B p) auf dem Rücken und an den Seiten einschliesst. Die Bauchseite der Schale ist tief ausgeschnitten. Einzige Art:
Sp. Bellardi d’Orb. (Fig. 563 A, B). Unteres Miocän. Turin.
Spirula Lmk. (Fig. 564). Die spirale Einrollung der Schale ist weit vollständiger als bei der vorigen Gattung. Das Rostrum bildet einen dünnen, runzeligen Ueberzug auf der Schale, sonst ist es bis auf eine zuweilen erhaltene Kalklamelle, welche die Umgänge mit einander verbindet, verschwunden. Der erweiterte Sipho (s) wird in seiner ganzen Ausdehnung von trichterförmigen Septaldüten umgeben, seine blindsackförmige Endigung (c) ist in der kugeligen Embryonalblase (a) durch einen zarten Strang, den sog. Prosipho (p), festgeheftet. Die Schale ragt am Hinterende des Thieres theilweise aus dem Mantel hervor; an ihren vorderen Theil heften sich die Körper- und Trichtermuskeln an.
Sp. Peronii Lmk. (Fig. 564). Häufig in den tropischen Meeren; das Thier wird selten gefunden, während die Schalen häufig sind.
5. Unterfam. Sepiinae.
Hierher gehören einige tertiäre und zahlreiche lebende Formen, deren Schalen alle Merkmale der Belemnitenschale, wenn auch in veränderter Gestalt bewahrt haben. Sie zeichnen sich durch die starke Erweiterung der Siphonalhöhlung, durch Reduction des Rostrums und durch Verlegung der Luftkammern auf die Rückenseite des Thieres aus. Eine eocäne Gattung Belosepia nimmt eine Mittelstellung zwischen den Belemniten und den jüngeren Formen ein, insofern die neuen Merkmale noch weniger ausgeprägt sind. Am typischsten kommen diese bei der Gattung
Sepia Lmk. (Fig. 565) zum Ausdruck. Die schildförmige, schwach bauchwärts gekrümmte Schale (»Schulp«) liegt auf der Rückenseite des Thieres im Mantel eingeschlossen. Gegen den Rücken gesehen zeigt die Schale das ovale, gekörnelte Rückenschild (B r’, C r’), welches sich nach unten in einen zurückgebogenen Stachel, das Rostrum (r), verschmälert. Eine dünne, seitlich über den Schalenrand hinausragende (B c) Conchyolinlamelle (c) trennt das Rückenschild von der Schale (g, g’, w). Dieser Lamelle liegt die Schalenwand (s’) direkt an. Auf der Rückenseite ist die Schale bis zum vorderen abgerundeten Ende verlängert (A), auf der Bauchseite ist sie verkürzt (A s’’, D s’’), so dass der ringsum geschlossene Theil der Schalenhöhlung wenig tiefer ist. Die Scheidewände des Phragmokons werden nur auf der Rückenseite durch niedrige Luftkammern getrennt und durch ein zartes Balkenwerk theilweise verkalkter Conchyolinmembranen verbunden (w); sie bilden hier eine nach oben immer dicker und breiter werdende Masse, den sog. Wulst (A w); gegen den Rücken zu sind sie hoch hinauf gezogen, so dass bei einer Ansicht der Schale vom Bauche her die letzte Septalfläche in ihrer ganzen Ausdehnung sichtbar wird (A se). Der Eingeweidesack des Thieres hat sich in der Siphonalröhre bis zum Boden der Schale hinabgesenkt und so den Sipho zu einer weiten Höhle (D g) umgestaltet; die seitlichen und vor dem Sipho gelegenen Theile der Scheidewände sind als sog. Gabel (g), welche durch Asymptotenlinien (A a) von dem Wulst geschieden wird, fest auf einander und gegen die Schale (s’, s’’) gedrückt. Auf der Bauchseite tritt ihr lamellärer Bau im Längsschnitt (D g), auf den Seiten im Querschnitt (C g) deutlich hervor. Die Scheidewände des Wulstes (E s1–s3) verlängern sich nach hinten zu Septaldüten (E m), welche bis zum vorhergehenden Septum herabreichen. Die ventrale Wand der Scheide ist häufig nach abwärts und gegen das Rostrum zu umgeschlagen (Sepia officinalis L.). Der Stachel zeigt im Längsschnitt (D r) den dütenförmigen Bau und die Apicallinie der Belemnitenscheide.
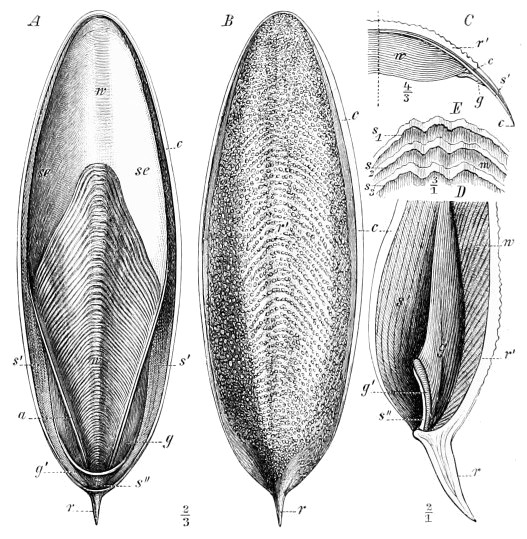
Fig. 565. Schulp von Sepia esculenta Hoyle. Japanische Küste. A Schale von der Bauchseite aus gesehen. B dieselbe vom Rücken aus. C Querschnitt der Schale in ungefährer Höhe des Buchstabens s’ Fig. A. D medianer Längsschnitt des unteren Theiles der Schale. E vergrösserte Ansicht der Bauchseite des Wulstes. r = Rostrum (in Fig. D die Apicallinie zeigend); r’ = Rückenschild; c = die Conchyolinlamelle, welche dasselbe von der Schale trennt; s’ = Schalenwand; s’’ = dieselbe auf der Bauchseite; w = Wulst (dorsaler Theil der Luftkammern); se = letzte Scheidewand; s3–s1 = drei successive Scheidewände von der Siphonalhöhlung aus gesehen; m = die herabgebogenen Septaldüten; g, g’ = Gabel (seitlicher [g] und ventraler [g’] Theil der Scheidewände); a = Grenzlinie zwischen Wulst und Gabel (Asymptotenlinie).
Die Gattung tritt bereits im Eocän auf; eine Reihe von Arten sind aus dem Neogen bekannt, in der heutigen Schöpfung gehört sie zu den gemeinsten Arten und findet vielfach als Nahrungsmittel Verwendung. Der Schulp liefert das os sepiae.
S. officinalis L. Gemein.
S. esculenta Hoyle (Fig. 565). Japanische Küste.
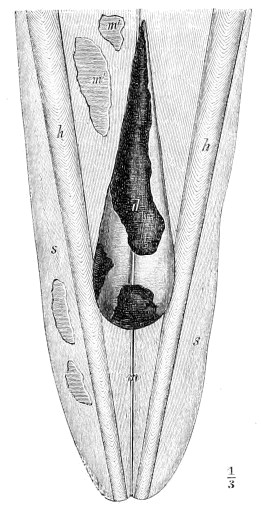
Fig. 566. Geoteuthis Bollensis Schübl. sp. Oberer Lias (ε). Württemberg. Der vordere Theil der Schale ist nicht erhalten. m = Mittellinie; d = Tintenbeutel; m’ = Mantelreste; h = Schalenstreifen mit hyperbolen Linien; s = Seitenflügel.
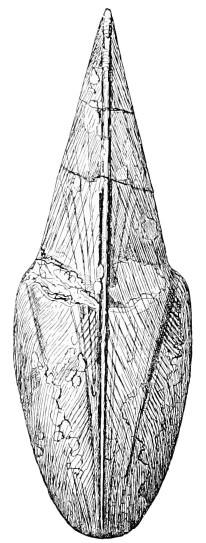
Fig. 567. Beloteuthis Schuebleri Qu. sp. Oberer Lias (ε). Württemberg. Der Mittelkiel sowie die abgesetzten Seitenflügel sichtbar.
B. Chondrophora.
Die stärker reducirten Schalen der Chondrophora lassen die einzelnen Theile der Phragmophorenschale z. Th. nicht mehr deutlich erkennen. Eine keulenförmige Scheide ist nicht mehr vorhanden, vielmehr die ganze Schale zu einem Blatte platt gedrückt, welches gar keine oder nur unvollkommene Verkalkungen aufweist. Nicht selten betheiligt sich phosphorsaurer Kalk an der Bildung derselben. Tintenbeutel (Fig. 566 d), Reste des schwach verkalkten Mantels (Fig. 566 m’) und Abdrücke des Weichkörpers werden nicht selten mit den Schulpen zusammen gefunden. Als Beispiele dieser fossil im Allgemeinen seltenen, aber in gewissen Schichten des Jura (Posidonienschiefer, Solenhofener Kalk) häufig sich findenden Abtheilung mögen erwähnt werden:
Geoteuthis Mnstr. (Fig. 566). Schale aus abwechselnden Lagen horniger und kalkiger (Kalkphosphat) Substanz bestehend. Zwei nach hinten convergirende Streifen mit hyperbolarer Liniirung (h) schliessen ein dreieckiges Rückenfeld ein, auf welchem meist Tintenbeutel (d), dessen gagatähnliche Masse noch als Tusche benutzt werden kann, und Reste des verkalkten Mantels (m’) angetroffen werden. Eine Mittellinie (m) durchzieht das Rückenfeld der Länge nach. Die Seitenflügel (s) zeichnen sich durch eine nach abwärts laufende Streifung aus. Im Lias von England und Süddeutschland nicht selten.
G. Bollensis Schübl. sp. (Fig. 566). Oberer Lias (Posidonienschiefer). Württemberg.
Beloteuthis Mnstr. (Fig. 567). Die dünne, grösstentheils hornige, nur wenig (phosphorsauren) Kalk enthaltende Schale ist pfeilförmig, nach vorn zugespitzt, hinten blattförmig verbreitet. Ein Mittelkiel durchzieht das deutlich abgegrenzte Mittelschild. Oberer Lias. Süddeutschland.
B. Schuebleri Qu. sp. (Fig. 567). Oberer Lias (ε). Württemberg.
Etwa 8 weitere Gattungen sind aus Jura und Kreide bekannt. Die lebenden Repräsentanten sind sehr zahlreich.
Geologische Verbreitung und Stammesgeschichte der Belemnoidea.
Der phragmophore Zweig dieser Ordnung ist in hinreichender Vollständigkeit überliefert, um die allmähliche Umwandlung der ursprünglich ammonoiden Schale (mit Embryonalblase und fadenförmigem, bauchständigem Sipho) in eine innere, schulpförmige verfolgen zu können. Die Aulacoceratinae stehen durch die weite Entfernung der Septa und die schwach angedeutete Zurückdrängung der ventralen Schalenwand als vermittelnde Gruppe da. Das Thier der jüngeren Belemniten war jedenfalls schon weiter aus der Schale herausgetreten und hatte dieselbe vom Bauche aus gegen den Rücken zu theilweise oder ganz umwachsen. Die damit verbundene Reduction der eigentlichen Schale war bei den Belemnoteuthinae am raschesten vor sich gegangen (schon in der Trias); an sie dürfte sich deshalb die Mehrzahl der Chondrophora anschliessen. Langsamer und in zweifacher Weise verkümmerte die Schale bei den jüngeren Nachkommen der Belemniten. Die Sepiinae haben alle Theile der Belemnitenschale, besonders das Proostracum beibehalten, die Spirulinae dagegen erlangten den höchsten Grad der Beweglichkeit durch vollständige Verdrängung desselben; ihre Schale wird nur noch hinter dem Eingeweidesack erzeugt und ragt aus dem gespaltenen Mantel heraus. Welches im einzelnen Falle die älteren Vorläufer der heutigen Chondrophoren waren, ist noch nicht ermittelt. Die Tendenz der gesammten Entwickelung des Belemniten-Stammes geht nach freier Bewegung des Thieres. Dieser Vorgang vollzieht sich auf die Weise, dass das Thier auf der Bauchseite aus der Schale heraustritt und mit dem Mantel dieselbe umwächst. Die 2 überzähligen, im Embryo am Rücken entstehenden und sich erst später zwischen die anderen einschiebenden (Fang-) Arme, welche zur Bezeichnung Decapoda Veranlassung gegeben haben, dürften naturgemäss als durch die Umwachsung der Schale hervorgerufene Auswüchse des Mantels zu deuten sein. Wie die terrestrischen Nacktschnecken als die höchstorganisirten Typen der Klasse angesehen werden müssen, so stehen auch die Belemnoidea, welche auf die gleiche Weise sich von der äusseren Schale befreit, als die vollkommensten Cephalopoden da.
VIII. Kreis: Arthropoda (Gliederthiere).
Die Arthropoden sind seitlich symmetrische, quergegliederte (segmentirte) Thiere mit gegliederten, verschiedenen Functionen angepassten Gliedmaassen, mit Gehirn und Bauchmark.
Der Körper zerfällt der Länge nach in eine geringere oder grössere Zahl von Gliedern oder Segmenten, deren jedes ein Paar gegliederter Anhänge auf der Bauchseite tragen kann. Meist gruppiren sich eine Anzahl von Segmenten (sammt den dazugehörigen Anhängen) zu functionell geschiedenen Leibesabschnitten zusammen, wobei innerhalb eines solchen Abschnittes vielfach eine Verschmelzung der Segmente und eine Reduction der Anhänge eintritt. Oft lassen sich 3 Leibesabschnitte als Vorderleib oder Kopf, Mittelleib oder Thorax und Hinterleib oder Abdomen unterscheiden; häufig verschmilzt der Mittelleib ganz oder z. Th. mit dem Vorderleibe zu einem einzigen Abschnitte, der Kopfbrust (oder Cephalothorax), in welchem Falle der gesammte Körper nur aus 2 Abschnitten zu bestehen scheint. Die Anhänge des Kopfes sind zumeist zu Fühl- (Antennen) und Fresswerkzeugen (Maxillen und Mandibeln) umgestaltet, diejenigen des Mittel- und Hinterleibes dienen zur Fortbewegung (Gangbeine) oder zur Athmung oder auch wohl zur Copulation bez. zur Brutpflege.
Das Nervensystem lässt fast durchgängig eine ähnliche Segmentirung erkennen, wie der Körper. Die Augen sind entweder einfach, punktförmig (Stemmata oder Punktaugen), oder sie setzen sich aus einer Anzahl von Kegeln zusammen (zusammengesetzte Augen), welche der Oberfläche des Organs ein facettirtes Aussehen verleihen. Die zellige Epidermis sondert eine (selten) weiche oder feste, aber biegsame (chitinöse), bei Wasserbewohnern durch Aufnahme von kohlensaurem und phosphorsaurem Kalk starr werdende Lage als Hautskelet ab.
Die Gliederthiere waren ursprünglich wohl alle Wasserbewohner mit Kiemenathmung. Die Mehrzahl der fossil bekannten und lebenden Formen ist dem Aufenthalte in der Luft und damit der Athmung durch Luftröhren (Tracheen) oder Luftsäcke angepasst.
Man unterscheidet folgende Klassen der Gliederthiere:
I. Klasse: Crustacea (Krebsthiere). Fast ausnahmslos durch Kiemen athmende Wasserbewohner. 0–2 Fühlerpaare am Kopfe, zahlreiche Beinpaare am Mittelleibe, meist auch am Hinterleibe. Sehr häufig ein fester Panzer vorhanden. Cambrium-Gegenwart.
II. Klasse: Arachnoidea (Spinnenthiere). Luftathmende Thiere mit verschmolzenem Vorder- und Mittelleibe. Fühler fehlen; 4 Beinpaare; Hinterleib ohne Anhänge. Silur-Gegenwart.
III. Klasse: Myriapoda (Tausendfüssler). Luftathmende Thiere mit gesondertem Kopfe und sehr zahlreichen, gleichartigen Leibessegmenten und Anhängen. Devon-Gegenwart.
IV. Klasse: Hexapoda (= Insecta, Insecten). Luftathmende Thiere mit 2 Fühlern am Kopfe; mit 3 Beinpaaren am dreigliedrigen Mittelleibe. Hinterleib 9- oder 10 gliedrig, ohne Anhänge. Silur-Gegenwart.
1. Klasse: Crustacea (Krebsthiere).
Litteratur über Crustacea.
Gerstaecker, A., in Bronn’s Klassen u. Ordnungen des Thierreichs. Bd. V. Gliederthiere. I. Crustacea; 1. Hälfte (Cirripedia, Copepoda, Branchiopoda, Poecilopoda, Trilobitae). Leipzig 1866–1879. 2. Hälfte, noch nicht vollendet (Isopoda, Amphipoda). 1881–1884.
Milne-Edwards, H. Histoire naturelle des Crustacés. 3 vol. Paris 1834–1840.
Da die Krebsthiere mit wenigen Ausnahmen Wasserbewohner sind, athmen sie durchgängig mit Hülfe von Kiemen, welche Anhänge an den Gliedmaassen des Hinter- oder Mittelleibes bilden oder im Inneren der Kopfbrust liegen. Die Segmentirung des Körpers ist fast immer sehr deutlich und die Anzahl der Segmente und ihrer Anhänge in der Regel sehr beträchtlich, namentlich im Vergleich mit der geringen Zahl der Gliedmaassen bei den Arachnoidea und Hexapoda. Die Gesammtform des Körpers und seine Zertheilung in äusserlich erkennbare Regionen unterliegt beträchtlichen Schwankungen in den einzelnen Ordnungen, zumal bei Formen ohne Fortbewegungsvermögen. Der sehr häufig entwickelte, chitinöse oder kalkige Panzer wiederholt häufig die Segmentirung des Leibes in mehr oder weniger vollständiger Weise, oft bildet er aber nur eine einfache oder in der Mittelebene getheilte Platte, welche das ganze Thier oder den Vorder- und — theilweise oder ganz — den Mittelleib bedeckt (Cephalothorax). Ein Theil der heut zu Tage lebenden Krebsthiere durchläuft ein Entwickelungsstadium, in welchem der fast immer unsegmentirte, schalenlose Körper 3 Paare von langen Anhängen besitzt, die späteren Antennen und Mandibeln — Nauplius-Stadium (Fig. 568). Die höher organisirten Formen dagegen verlassen das Ei in der Form einer Larve, die als Zooea (Fig. 569) bezeichnet wird. Dieses Stadium zeichnet sich durch den Besitz eines meist gedornten, seitlich zusammengedrückten Cephalothoraxschildes, einer grösseren Anzahl (7) vorderer Anhangspaare und eines gegliederten, aber anhangslosen Abdomens aus, während die 6 letzten Brustsegmente des Mittelleibes noch nicht geschieden sind. Eine dritte Art des Larvenstadiums (Trilobiten-Stadium) wird nur selten beobachtet (Fig. 570). Die Larve ist plattgedrückt, zeigt eine Dreitheilung der Länge nach und besitzt sowohl an dem ungegliederten Kopfbrustschilde als auch an dem segmentirten Abdomen Anhänge, die kaum oder gar nicht seitlich über den Körper hinausragen.
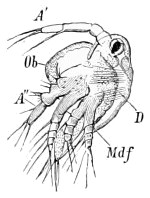
Fig. 568. Nauplius-Larve von Balanus von der Seite gesehen. A’ = erste Gliedmaasse (erste Antenne); A" = zweite Gliedmaasse (zweite Antenne); Mdf = dritte Gliedmaasse (Mandibularfuss); Ob = Oberlippe; D = Darm.
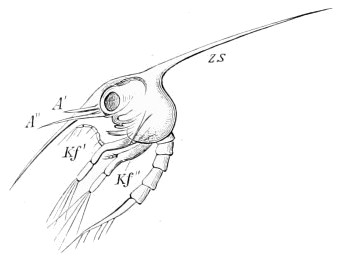
Fig. 569. Zooea-Larve einer Krabbe (Thia) nach der ersten Häutung. A’ = erste, A" = zweite Antenne; Kf’ = erster, Kf" = zweiter Kieferfuss; ZS = Rückenstachel.
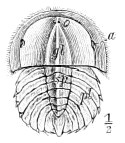
Fig. 570. Trilobiten-Stadium der Larve von Limulus; Ansicht vom Rücken. gl = Mitteltheil des Cephalothorax (Glabella); sp = Mitteltheil des Abdomens (Spindel); pl = Seitentheile (Pleuren) des Abdomens; a = Auge; o = Mittelaugen.
Wegen der Festigkeit des chitinösen oder kalkigen Hautskelets und der Lebensweise der Crustacea sind fossile Reste derselben namentlich in den ältesten Formationen recht häufig. Der Panzer giebt zumeist nicht die Gliederung des Körpers vollständig wieder, vielmehr ist ein einfaches oder in der Mittellinie getheiltes Rückenschild, welches die Segmente des Vorder- und Mittelleibes, zuweilen auch diejenigen des Hinterleibes vollständig einhüllt, recht häufig vorhanden.
Mit Einschluss der ausgestorbenen Gruppen theilen wir die Crustacea in folgende Ordnungen und Unterordnungen ein:
A. Palaeostraca. Mässig grosse bis sehr grosse, platte Thiere mit widerstandsfähigem, stets segmentirtem, dreigliedrigem Panzer, der meist auch der Länge nach dreitheilig ist. Zahl der Segmente grossen Schwankungen unterworfen. Augen stets unbeweglich. Vor dem Munde 0–1 Anhangspaar (Antennen).
1. Trilobitae. Panzer der Länge und Quere nach dreitheilig. Anhänge an allen Leibesregionen, kurz, nicht über die Seiten des Panzers hinausreichend. Die letzten Segmente nicht beweglich, zu einem (meist segmentirten) Schwanzschilde verschmolzen. Vor dem Munde gelegene Anhänge (Antennen) fehlen.
Cambrium — Carbon.
2. Xiphosura. Panzer der Länge und Quere nach dreitheilig. Anhänge kurz, nicht über die Seiten des Panzers hinausreichend. Die letzten Segmente zu einem beweglichen, anhangslosen Schwanzstachel verschmolzen. Ein kleines präorales Antennenpaar bei den lebenden Formen.
Silur — Gegenwart.
3. Gigantostraca. Panzer langgestreckt; Kopfschild relativ klein; Mittelleib aus 6 beweglichen, mit Kiemenanhängen versehenen Segmenten, Hinterleib aus 6 anhangslosen Segmenten und einem Endgliede bestehend. Längstheilung fehlt. Anhänge über den Körper hinausreichend. Ein kleines präorales Antennenpaar.
Silur — Carbon.
B. Euostraca. Kleine bis grosse, platte oder seitlich zusammengedrückte Thiere, mit segmentirtem Körper. Zahl der Segmente und Fusspaare zumeist constant (20). 2 präorale Fühlerpaare vorhanden. Panzer oft nur ein ungegliedertes Kopfbruststück oder den ganzen Körper bedeckend, zuweilen ganz fehlend. Meist Zooea-, seltener Nauplius-Entwickelung.
4. Phyllopoda. Panzer dünnschalig, als ein einfaches oder in der Mitte getheiltes Schild entwickelt, oder fehlend. Körper meist gegliedert, mit wechselnder Segmentzahl. 4 oder mehr Paare von blattförmigen Schwimmfüssen. Nauplius-Entwickelung.
Carbon — Gegenwart.
5. Leptostraca. Panzer dünnschalig, aus einem zweiklappigen (selten einfachen) Kopfbruststücke und meist einem unpaaren vorderen Stücke (Rostrum) bestehend. Hinterleib segmentirt, unbeschalt; letztes Segment stachelig zertheilt. Zahl der Segmente 22. Zooea-Entwickelung.
Silur — Gegenwart.
6. Malacostraca. Panzer fehlend oder quergegliedert. Meist ein Cephalothorax vorhanden. Zahl der Segmente constant 20 (Kopf und Brust 13, Hinterleib 6 + 1). Zooea-Entwickelung.
Devon — Gegenwart.
C. Entomostraca. Z. Th. kleine Thiere von niedriger Organisation. Körper oft ungegliedert oder Zahl der Segmente wechselnd. Panzer undeutlich dreitheilig, das ganze Thier einschliessend, zweiklappig oder aus zahlreichen, unregelmässig angeordneten Platten zusammengesetzt oder ganz fehlend. Nauplius-Entwickelung.
7. Ostracoda. Der kleine, seitlich zusammengedrückte Körper ist ganz von einem in der Mittelebene articulirenden, zweiklappigen Panzer eingeschlossen (Muschelkrebse).
Cambrium — Gegenwart.
8. Cirripedia. Festsitzende, häufig nur undeutlich gegliederte Thiere mit meist 6 Paaren von Rankenfüssen. Ein lederartiger, chitinöser Mantel umgiebt das Thier; derselbe enthält häufig eine geringere oder grössere Anzahl von polygonalen Kalkstücken, die in mehreren Längsreihen angeordnet sind.
Silur — Gegenwart.
9. Copepoda. Meist schmarotzende, schalenlose oder häufig deutlich segmentirte Thiere. Fossil unbekannt.
Mit Ausnahme der Copepoden kennt man alle Ordnungen im fossilen Zustande und zwar zumeist schon seit der Silurzeit. Für die Paläontologie und Geologie sind nur die Palaeostraca und unter diesen besonders die Trilobiten, ferner die schalentragenden Malacostraca und die Ostracoda von erheblicher Bedeutung.
A. Palaeostraca.
Unter diesem Namen fassen wir eine Anzahl vorwiegend paläozoischer, aber auch noch lebend in einer Gattung vertretener Formen zusammen, die sich von den übrigen Crustacea durch gewisse, z. Th. alterthümliche Merkmale unterscheiden. Der Körper und der ihm nicht nur auf der Oberseite, sondern z. Th. oder ganz auch auf der Unterseite umschliessende Panzer zeigt eine wechselnde, aber stets deutliche Segmentation und es heben sich 3 Leibesregionen von einander ab. Die Anhänge sind häufig nur sehr wenig differenziert und meist kurz; in der Regel sind nur Gehfüsse, zuweilen aber auch Schwimmfüsse entwickelt. Der Panzer bildet auf der Unterseite des Kopfes vorn fast ausnahmslos einen Umschlag, hinter welchem der Mund liegt. Niemals liegt mehr als ein Paar von Anhängen vor dem Munde (Antennen). Soweit wir über die embryologische Entwickelung unterrichtet sind, verläuft dieselbe nicht durch ein Nauplius oder Zooea-Stadium, wie bei den übrigen Crustacea, sondern es besitzt die Larve einen 1- oder 2gliedrigen, mit zahlreichen, kurzen Anhängen versehenen Rückenpanzer, von dem sich später die übrigen Segmente abgliedern (Trilobiten-Stadium). Die älteste und gleichzeitig wichtigste Abtheilung sind die
1. Unterordnung Trilobitae.
Litteratur über Trilobitae.
Angelin, N. P. Palaeontologia Scandinavica. 1. Crustacea formationis transitionis. Lund 1853–54. 4⁰ mit 46 Tafeln. 2. Ausgabe: Trilobitae, mit 42 Tafeln. Stockholm 1878.
Barrande, J. Système silurien du centre de la Bohème. Vol. I. Prag 1852. Supplem. 1874.
Beyrich, E. Ueber einige böhmische Trilobiten. Berlin 1845. Untersuchungen über Trilobiten. 2. Stück. Berlin 1846.
Brögger, W. C. Die silurischen Etagen 2 u. 3 im Christiania-Gebiet. Christiania 1882.
Burmeister, H. Die Organisation der Trilobiten. Berlin 1843.
Hall, J. Palaeontology of New-York. Vol. I. II. Albany 1847–1852.
Salter, J. W., and H. Woodward. A Monograph of British Trilobites. Palaeont. Society 1867–84.
Schmidt, Fr. und Holm, G. Revision der ostbaltischen silurischen Trilobiten. I. Phacopiden, Cheiruriden und Encrinuriden. Mém. de l’acad. imp. de St. Pétersbourg. 1881 sér. VII. Tome 30. II. Acidaspiden und Lichiden. ibid. 1885 sér. III. Tome 33. III. Illaeniden. ibid. 1886 sér. III. Tome 33.
Walcott, C. D. The Trilobite. New and old evidence relating to its organisation. Mus. Compar. Zoology 1881. Vol. VIII No. 10.
Der fast allein bekannte Panzer der Trilobiten bedeckt den Rücken und als Umschlag den randlichen Theil der Bauchseite des Thieres. Die aus parallelen Lagen von kohlen- und phosphorsaurem Kalk mit Chitin bestehende Schale besitzt stets nur geringe Dicke.
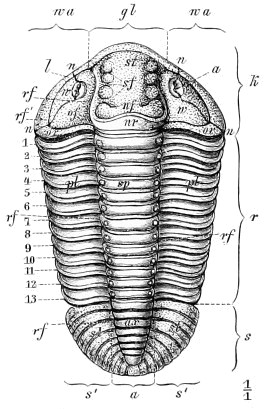
Fig. 571. Eine vollständige Trilobitenschale gegen die Rückenseite gesehen (Calymene Blumenbachi Bgt. Obersilur. England). k = Kopfschild; r = Rumpf; s = Schwanzschild; gl = Glabella; wa = Wangen; w = sog. beweglicher (innerer), w’ = sog. unbeweglicher (äusserer) Theil derselben; n = Gesichtsnaht; l = Randsaum; a = Auge; st = Stirn; sf = Seitenfurchen; nf = Nackenfurche; of = Occipitalfurche; nr = Nackenring; or = Occipitalring; rf = Rückenfurche; rf’ = Randfurche; sp = Spindel; pl = Pleuren; a, ax = Achse; s’, sl = Seitenlappen; 1–13 = die 13 Rumpfsegmente.
Vom Rücken her betrachtet (Fig. 571) zerfällt die Schale der Länge nach in 3 deutlich gesonderte Regionen: 1) das Kopfschild (k), 2) den Rumpf oder Thorax (r) und 3) das Schwanzschild oder Pygidium (s). Zwei, der Längsachse der Schale parallel laufende Rückenfurchen (rf) sondern eine mittlere (axiale — a) Partie von den beiden seitlichen (s’). Auf dem Kopfschilde heisst der mittlere Theil Glabella (gl), die beiden seitlichen werden Wangen (Genae — wa) genannt. Der Rumpf zerfällt in die Spindel (sp) und die Seitentheile (oder Pleuren — pl), während die Fortsetzung der Spindel auf dem Schwanzschilde als Achse (ax), die seitlichen Theile als Seitenlappen (sl) bezeichnet werden. Nur die Segmente des Rumpfes sind stets scharf von einander getrennt und konnten gegen einander bewegt werden, während die oft nur undeutlich oder gar nicht geschiedenen Segmente des Kopf- und Schwanzschildes fest mit einander verbunden waren.
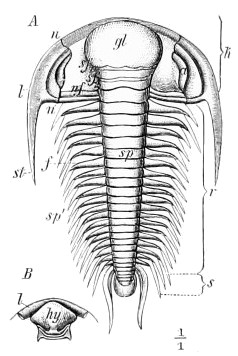
Fig. 572. Paradoxides Bohemicus Barr. Cambrium. Böhmen. A Schale gegen die Rückenseite gesehen. st = Wangenstachel; sp’ = Spitzen der Pleuren; f = Furchen derselben. B Stirn von der Unterseite. l = Stirnumschlag; hy = Hypostom. Die übrigen Bezeichnungen wie in Fig. 571.
Das Kopfschild (Fig. 571 k) besitzt einen gebogenen Vorder- oder Aussenrand und einen geraden Hinterrand; an letzteren schliesst sich der Rumpf an. In der Regel ist die Glabella (gl) durch tiefe Rückenfurchen (rf) von den Wangen (wa) abgesetzt; zuweilen aber eine solche Trennung kaum angedeutet (Fig. 586). Ebenso fehlt eine Segmentirung zuweilen vollständig (Fig. 586), häufiger trennt eine dem Hinterrande parallele Nackenfurche (Fig. 571 — nf) auf der Glabella einen Nackenring (nr), ihre seitliche Fortsetzung auf den Wangen als Occipitalfurche (of) einen Occipitalring (or) ab. Im weiteren, dem Aussenrande parallelen Verlaufe führt die Furche den Namen Randfurche (rf’) und der durch sie von den Wangen und der Glabella abgetheilte, flache oder wulstige Randsaum heisst Limbus (l). Während eine eigentliche Segmentirung den Wangen abgeht, wird die Glabella häufig durch 1–4 quere Furchen — Seitenfurchen (sf) —, die sich gegen aussen meist stark vertiefen, in Lappen zerlegt. Der vorderste, vor der ersten Seitenfurche gelegene Theil der Glabella wird als Stirn (st) bezeichnet. Nur selten besteht das Kopfschild aus einem einzigen Stück; in der Regel verläuft jederseits über die Wangen eine Naht — Gesichtsnaht (n) —, welche vielleicht eine jedenfalls ganz unbedeutende Beweglichkeit des äusseren Wangentheils (w’) gegen den inneren (w) ermöglichte. Bei der Fossilisation hat sich wenigstens nicht selten der äussere Theil für sich abgelöst. Die hinteren Ecken der Wangen verlängern sich nicht selten zu Wangenstacheln (Fig. 572 st). Die Gesichtsnaht (n) beginnt jederseits entweder am Hinterrande (Fig. 572) oder an den Hinterecken (Fig. 571) oder am Aussenrande des Kopfschildes (Fig. 588), umfasst im bogigen Verlaufe die (selten fehlenden) Augen (a) und läuft gegen den Vorderrand zu. Die beiden Aeste vereinigen sich entweder schon auf der Oberseite, indem sie die Glabella umkreisen (Fig. 584) oder sie überschreiten getrennt den Vorderrand (Fig. 572) und vereinigen sich erst auf der Unterseite am Hinterrande des Umschlags oder schon früher in einer sog. Schnauzennaht (Fig. 574 sn). Durch die Gesichtsnähte zerfällt das Kopfschild in ein sog. Mittelschild (Glabella + unbeweglicher Theil der Wangen) und 2 seitliche, die Augen tragende Randschilder (beweglicher Theil der Wangen).
Die Augen (a) fehlen zuweilen; sind sie ausgebildet, so liegen sie hart an der Gesichtsnaht ausserhalb derselben. In der Regel besitzt die Sehfläche (Fig. 573 sf) eine sichelförmige, nach den Seiten convexe Gestalt und liegt auf oder an einem mehr oder minder hohen, aus der Fläche des Randschildes oft steil emporsteigenden, zuweilen stielartigen Augenwulste; der dem Augenwulste anliegende Theil des Mittelschildes wölbt sich nicht selten, durch die Gesichtsnaht (B n) von dem Augenwulste getrennt, als sog. Palpebralflügel (B pf) empor; zwischen ihm und dem Auge (B sf) verläuft die Gesichtsnaht (B n). Die Augen sind fast ausnahmslos zusammengesetzt, nur bei einer Gattung — Harpes — treffen wir auf Augen, die aus 2 oder 3 einfachen Höckern (Punktaugen) bestehen. Die Zahl der Linsen (Facetten) in den zusammengesetzten Augen schwankt zwischen 14 und etwa 15,000. Meist werden die Linsen von einer gemeinsamen glatten Hornhaut überzogen, bei einer Gattung (Phacops — Fig. 573 C, D) durchbrechen die Linsen (l, l’) dieselbe (h), so dass die Oberfläche höckerig erscheint. Im Allgemeinen zeigen die Augen die Tendenz, sich mit ihrer Sehfläche geneigt zu der Oberfläche des Kopfschildes zu stellen, um ein seitliches Sehen zu ermöglichen. Blinde Formen stehen sehenden oft in allen andern Kennzeichen sehr nahe, tragen auch häufig noch einen Augenwulst (Fig. 572 a).
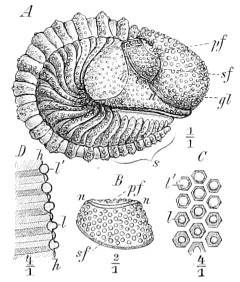
Fig. 573. Phacops latifrons Br. Mitteldevon. Eifel. A eine vollständig eingerollte Schale von der Seite gesehen. B–D Auge von Phacops, B von der Seite. C vergrösserte Oberfläche. D Querschnitt durch einige Linsen. s = Schwanzschild; gl = Glabella; n = Gesichtsnaht; sf = Sehfläche (Auge); pf = Palpebralflügel; h = Hornhaut; l’ = Linsen mit vollständig erhaltener, l = mit abgewitterter Oberfläche.
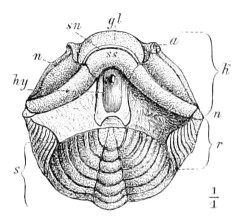
Fig. 574. Calymene tuberculosa Salt. Obersilur. England. Eingerollte Schale von vorn gesehen, mit dem Hypostom (hy) in natürlicher Lage; dasselbe ist durch die Hypostomalnaht von dem Schnauzenschilde (ss) des Umschlages getrennt. Die Aeste der Gesichtsnaht (n) werden durch eine Schnauzennaht (sn) vereinigt. Die übrigen Bezeichnungen wie in Fig. 571.
Der Rumpf setzt sich stets aus einer geringeren oder grösseren Anzahl untereinander beweglicher Segmente zusammen, welche durch die Rückenfurchen (Fig. 571 rf) in 3 fest mit einander verbundene Theile, den Spindelring (sp) und die beiden Seitentheile oder Pleuren (pl) zerlegt werden. Der Vorderrand des Spindelrings ist mit einem breiten, gerundeten Fortsatze versehen, welcher sich im ausgestreckten Zustande unter den vorhergehenden Spindelring schiebt. Beim Einrollen der Schale gleitet der Spindelring auf der Gleitfläche des vorhergehenden. An der Unterseite befindet sich (? immer) auf der Grenze zwischen Spindelring und Pleuren jederseits ein Gelenkknopf am Hinterrande und eine Gelenkpfanne am Vorderrande des Segmentes, welche die Articulation der Segmente vermitteln. Die Pleuren verschmälern sich häufig nach aussen und biegen nach rückwärts; ihre Oberfläche ist selten eben (Fig. 586), meist wird sie von einer schräg nach hinten laufenden Furche (Fig. 572 f) durchzogen, weniger häufig findet sich statt ihrer eine Leiste oder ein Wulst (Fig. 589). Ihre Enden laufen nicht selten in Spitzen aus (Fig. 572 sp’).
Die Segmente des Schwanzschildes sind unbeweglich mit einander verwachsen, ja häufig gar nicht mehr erkennbar (Fig. 586), in welchem Falle das Schwanzschild vom Rumpfe scharf abgesetzt erscheint. Oft tritt die Segmentirung nur auf der Achse deutlich hervor (Fig. 585 ax), während sie auf den Seitenlappen (sl) nur durch Streifen oder gar nicht angedeutet ist. Die Zahl der Segmente, aus deren Verschmelzung das Schwanzschild entstanden ist, schwankt zwischen 2 und 28. Die Achse reicht bald bis ans Ende des Pygidiums (Fig. 581), bald erscheint sie stark reducirt (Fig. 591); dazwischen finden sich alle möglichen Uebergänge.
Die Unterseite lässt bei guter Erhaltung stets einen Umschlag der Schale erkennen, der am Kopf- und Schwanzschilde zuweilen eine beträchtliche Breite erreicht. Der Umschlag des Mittelschildes (Fig. 574 ss) wird bisweilen durch 2 quere Verbindungsnähte, welche von der Schnauzennaht (sn) nach dem Rande des Umschlages verlaufen, von dem Umschlage der Randschilder getrennt; oft findet sich nur eine unpaare, mediane Verbindungsnaht. Sehr häufig ist an den Hinterrand des Stirnumschlages, aber von demselben durch eine Naht getrennt, ein Oberlippenstück oder Hypostom (hy) befestigt, eine im Allgemeinen convexe, aber in sehr verschiedener Weise mit Furchen, Vertiefungen, Höckern oder einer hinteren Ausbuchtung versehene, am Hinterrande und an den Seiten freie Platte, welche vielleicht einer geringen Bewegung fähig war. Erst hinter derselben lag der Mund.
Die Anhänge der Bauchseite der Trilobiten sind bisher nur unvollständig bekannt geworden. Jedenfalls war die Bauchseite, soweit sie nicht vom Umschlage des Rückenschildes und vom Hypostom bedeckt wurde, von einer weichhäutigen, fossil nicht erhaltbaren Membran bekleidet. Die paarigen Anhänge inserirten unterhalb der Rückenfurche zu beiden Seiten einer mittleren Reihe von schmalen, unter der Spindel und Achse gelegenen Bauchplatten (Fig. 575 b). Unter dem Kopfschilde befanden sich hinter dem Hypostom zu beiden Seiten des Mundes im Ganzen 4 Gliedmaassenpaare, von denen das letzte (hinterste) wegen seiner bedeutenden Grösse als Kieferfuss (Fig. 576 A kf) angesprochen wird. Sie dienten wohl z. Th. als Kauorgane. Die Rumpfsegmente und bei manchen Gattungen auch diejenigen des Schwanzschildes trugen ebenfalls gegliederte, aber in 2 Aeste gespaltene Anhänge (Fig. 575); der innere Ast (Endopodit — em) übertrifft den äusseren (Exopodit — ex) an Länge und Zahl der Glieder. Aussen an der Basis des Anhanges befinden sich spirale Bänder (sp), die als Kiemen gedeutet werden.
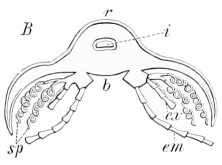
Fig. 575. Querschnitt eines Trilobiten-Rumpfgliedes (Calymene senaria Conr.) mit den vervollständigten Anhängen. r = Rücken-, b = Bauchseite; i = Verdauungscanal; em = Endopodit; ex = Exopodit; sp = spirale Anhänge zwischen letzteren und der Schale.
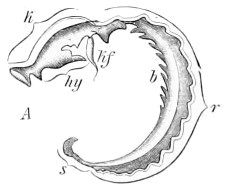
Fig. 576. Mittlerer Längsschnitt durch eine eingerollte Trilobitenschale (Calymene senaria Conr.). k = Kopfschild; r = Rumpf; s = Schwanzschild; hy = Hypostom; kf = Kieferfuss; b = Bauchseite.
Die Eigenthümlichkeiten der Organisation der Trilobiten dürften sich, soweit sie bisher ermittelt werden konnten, folgendermaassen zusammenfassen lassen:
Die Zahl der Segmente, welche zur Rumpf- und Schwanzregion zusammentreten, unterliegt grossen Schwankungen. Die Segmentation des Kopfschildes ist häufig durch die Nackenfurche und die Querfurchen der Glabella, eine seitliche Abgliederung des Augenlappens durch die Gesichtsnaht angedeutet. Letztere bedingt meist einen Zerfall des Kopfschildes in ein Mittelschild und 2 Randschilder. Der Mund liegt auf der Unterseite weit rückwärts, hinter dem Schalenumschlage und dem Hypostom (Fig. 576); der Oesophagus und Magen befanden sich wahrscheinlich zwischen Glabella und Hypostom eingeschlossen. Wenige (4), wohl nur unvollkommen zur Kauthätigkeit angepasste, kurze Gliedmaassenpaare unter dem Kopfschilde; ausserdem zahlreiche, wenig differenzirte, relativ kurze Anhänge (Gehfüsse am Rumpfe und z. Th. jedenfalls auch am Schwanzschilde. Vor dem Munde gelegene Fühlwerkzeuge (Antennen) fehlen. Augen fast ausnahmslos zusammengesetzt, unbeweglich, nie am Rande des Kopfschildes gelegen. Körper häufig einrollbar. Im Verlaufe der individuellen Entwickelung wird entweder das Kopfschild allein oder gleichzeitig das Schwanzschild oder der Rumpf angelegt. Nach und nach entstehen die fehlenden Theile durch Abgliederung neuer Segmente. Die Zahl der Segmente im ausgewachsenen Zustande erweist sich nur für kleine Formenkreise als constant. Die Grösse der Trilobiten bewegt sich zwischen wenigen mm und fast 0,5 m.
Eine naturgemässe Classification, welche die genetische Entwickelung des Stammes zum Ausdruck bringt, scheint z. Z. noch nicht durchführbar zu sein. Nachstehende Tabelle möge dazu dienen, die Bestimmung der wichtigsten Gattungen zu erleichtern.
Zahl der BrustsegmenteFig.
A.Gesichtsnaht fehlend oder undeutlich.
a.Schwanzschild dem Kopfschilde an Grösse und Verzierung ähnlich.
Agnostus.2577
b.Schwanzschild kleiner und anders gestaltet als Kopfschild.
Trinucleus.5–6578
B.Gesichtsnaht am Hinterrande beginnend.
a.Wangen nur seitlich von der Glabella gelegen.
α.Glabella und Pygidium glatt.
Illaenus.10 (9, 8)586
β.Glabella mit Längsfurchen, Pygidium mit radialen, von der kurzen Achse ausstrahlenden Furchen.
Lichas.9, 10—
b.Wangen die Glabella vorn umgebend.
α.Schwanzschild klein, mit wenigen, meist queren Segmenten. Seitenlappen schmal.
1.Glabella ohne oder mit undeutlichen Seitenfurchen.
Olenus.12–15579
2.Glabella mit deutlichen (2–4 Paar) Seitenfurchen.
Paradoxides.16–20580
β.Schwanzschild gross, mit zahlreichen, meis queren, oft undeutlichen Segmenten.
1.Glabella vorn verbreitert.
Asaphus.8585
2.Glabella vorn nicht verbreitert.
Proëtus, Phillipsia.8–10590
γ.Schwanzschild gross, mit sehr kurzer Achse und radial von derselben ausstrahlenden Furchen.
Bronteus.9–10591
C.Gesichtsnaht dicht vor oder dicht hinter den Hinterecken beginnend.
a.Spindel sehr breit, wenig scharf von den Pleuren geschieden.
Homalonotus.13584
b.Spindel schmal, Rückenfurchen scharf.
α.Seitenfurchen der Glabella flach. Augenleiste vorhanden.
Conocephalus.14–15581
β.Seitenfurchen der Glabella tief. Augenleisten fehlend.
Calymene.13582
D.Gesichtsnaht am Aussenrande beginnend.
a.Pleuren einfach, gefurcht.
Phacops.11{587
588
a.Pleuren nur auf der inneren Hälfte gefurcht.
Cheirurus.11 (10,12)589
Agnostus Bgt. (Fig. 577). Panzer klein; Kopf- (k) und Schwanzschild (s) nahezu gleich gross, halbkreisförmig oder elliptisch, fast ausnahmslos mit schmalem Randsaum (l). Rumpf (r) zweigliedrig. Glabella (gl) und Achse (ax) meist deutlich abgesetzt, häufig gegliedert. Die beiden Wangentheile zuweilen durch eine Furche vor der Glabella (x) getrennt. Pleuren gefurcht (f), Schwanzschild zuweilen mit einem Paar Stachelanhänge (st). Gesichtsnaht und Augen fehlen. Zahlreiche Arten im Cambrium (Skandinavien, England, Böhmen, Spanien, Nordamerika, China, Argentinien), namentlich häufig und gesellig (B) in den Alaunschiefern des Cambrium von Schonen; seltener im Untersilur. Als Diluvialgeschiebe in Norddeutschland häufig.
A. pisiformis L. (Fig. 577). Cambrium. Skandinavien, ? England.
A. trisectus Salt. Cambrium. England, Skandinavien.
A. nudus Beyr.}Cambrium. Skandinavien, Böhmen.
A. Rex Barr.
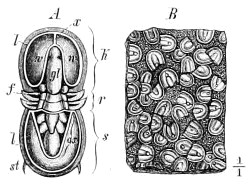
Fig. 577. Agnostus pisiformis L. Cambrium. Andrarum, Schonen. A ein vollständiger Panzer. ²⁄₁. B Gesteinsstück mit isolirten Kopf- und Schwanzschildern.
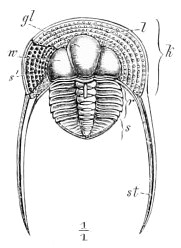
Fig. 578. Trinucleus ornatus Stbg. sp. Untersilur (D). Böhmen.
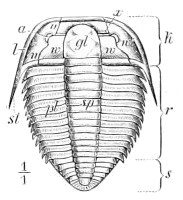
Fig. 579. Olenus truncatus Brünn. Cambrium. Andrarum, Schonen.
Bezeichnungen: k = Kopfschild; r = Rumpf; s = Schwanzschild; gl = Glabella; w, w’ = Wangen; n = Gesichtsnaht; a = Augen; st = Stacheln der Wangen oder des Pygidiums; sp = Spindel; pl = Pleuren; f = Furchen derselben; ax = Achse; l = Randsaum; s’ = Löcher desselben.
Trinucleus Lhwyd (Fig. 578). Kopfschild (k) höher und breiter als Rumpf (r) und Schwanzschild (s), hinten gewöhnlich in lange Stacheln (st) ausgezogen, an den Seiten und vorn von einem breiten, durchlochten (s’) Saume (l) umgeben, welcher die Gesichtsnaht, wenn sie überhaupt vorhanden, umkreist. Glabella und Wangen aufgeblasen, meist glatt; Seitenfurchen oder Augenhöcker selten angedeutet. 6 Rumpfsegmente, Achse das Ende des Schwanzschildes erreichend. Leitend für das Untersilur in Europa, Nordamerika, China.
Tr. Goldfussi Barr.}Untersilur (D). Böhmen, Frankreich.
Tr. ornatus Stbg. sp. (Fig. 578).
Olenus Dalm. (Fig. 579). Körper regelmässig dreitheilig. Kopfschild (k) grösser als das Pygidium (s), aber kleiner als der aus 12–15 Segmenten bestehende Rumpf (r). Gesichtsnähte (n) am Hinterrand beginnend, nach vorn convergirend. Augen (a) halbmondförmig, durch eine Querleiste (x) mit der eiförmigen, zuweilen undeutlich quergefurchten Glabella (gl) verbunden. Ein schmaler Randsaum (l) und häufig Wangenstacheln (st) vorhanden. Als Untergattungen werden abgeschieden:
Parabolina. Augen der Glabella nahegerückt.
Peltura. Augen nach vorn gerückt. Glabella bis dicht an den Vorderrand reichend.
Häufig im Cambrium Europas (ausg. Böhmen), Nord- und Südamerikas; bezeichnend für die obere Stufe der oberen Abtheilung (»Olenus-Stufe«).
O. truncatus Brünn (Fig. 579). Oberes Cambrium. Skandinavien.
O. (Parabolina) spinulosus Wahlb. sp. Oberes Cambrium. Skandinavien, England.
O. (Peltura) scarabaeoides Wahlb. sp. (Leth. pal., t. 1, Fig. 5). Oberes Cambrium. Skandinavien, England.
Paradoxides Brgt. (Fig. 580). Grosse, nach hinten stark verschmälerte Formen mit halbkreisförmigem Kopfschild (k), langem, aus 16–25 Segmenten bestehendem Rumpfe (r) und kurzem Schwanzschilde (s). Glabella vorn verbreitert, mit 2–4 Seitenfurchen (sf). Augenfläche (a) gross. Gesichtsnähte (n) am Hinterrande beginnend, zu den Augen convergirend, gegen den Aussenrand divergirend. Der dicke Randwulst (l) in Wangenstacheln (st) verlängert. Pleuren schräg gefurcht (f), in Spitzen (sp) auslaufend. Die breite Achse des schmalen, weniggliedrigen Schwanzschildes erreicht das Ende desselben nicht. Hypostom (B hy) klein, fünfseitig. Diese Gattung findet sich sehr häufig im Cambrium, sie ist leitend für die unteren Schichten der oberen Abtheilung desselben (»Paradoxides-Stufe«) in Europa und Nordamerika.
P. Bohemicus Barr. (Fig. 580).}Cambrium. Böhmen.
P. spinulosus Boeck.
P. Tessini Brgt.}Cambrium. Skandinavien.
P. Forchhammeri Ang.
P. rugulosus Cord. Cambrium. Skandinavien, Böhmen.
P. aurora Salt. Cambrium. Grossbritannien.
Conocephalus Zenk. (= Conocoryphe) (Fig. 581). Steht der Gattung Olenus nahe, ist aber durch bedeutendere Grösse, Einrollungsvermögen und den Verlauf der Gesichtsnaht (n) unterschieden, welche nahe den Hinterecken beginnt. Glabella (gl) vorn verschmälert; Seitenfurchen nach rückwärts gerichtet. Augen zuweilen durch eine Leiste (x) mit der Glabella verbunden, häufig aber nach vorn und nahe an die Glabella gerückt; oft fehlend. Zahlreiche Arten im Cambrium (über die ganze Erde verbreitet), selten im Untersilur.
C. Sulzeri Schl. sp. Cambrium. Böhmen, Spanien.
C. striatus Emm. (Fig. 581). Cambrium. Böhmen (Paradoxides-Sch.).
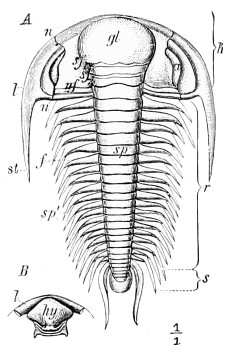
Fig. 580. Paradoxides Bohemicus Barr. Cambrium. Böhmen. A Schale von der Rückenseite. B Stirnumschlag (l) mit Hypostom (hy).
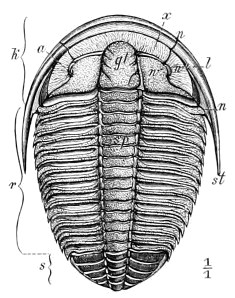
Fig. 581. Conocephalus striatus Emm. Cambrium. Böhmen.
Bezeichnungen: k = Kopfschild; r = Rumpf; s = Schwanzschild; gl = Glabella; sp = Spindel; sf = Seitenfurchen; nf = Nackenfurche; w, w’ = Wangen; a = Augen; n = Gesichtsnaht; l = Randwulst; st = Wangenstachel; f = Furchen, sp’ = Spitzen der Pleuren; x = Augenleiste.
Ebenfalls häufig im Cambrium sind die verwandten Gattungen:
Ellipsocephalus Zenk. Glabella durch tiefe Rückenfurchen, welche vorn winkelig zusammenlaufen, begrenzt. Gesichtsnähte fast parallel, nahe dem Aussenrande verlaufend.
E. Hoffi Schl. sp. (Leth. pal., t. 1, Fig. 9). Böhmen (Paradoxides-Sch.).
Sao Barr. Die eiförmige Glabella mit 3 tiefen Seitenfurchen und einer mittleren Längsfurche, durch eine Leiste mit den sichelförmigen Augen verbunden. Oberfläche gekörnelt. Einzige Art:
S. hirsuta Barr. (Leth. pal., t. 1, Fig. 8) im böhmischen Cambrium.
Calymene Brgt. (Fig. 582, 583). Meist langgestreckte, ovale Formen mit breitem Kopfschild (k) und 13 Rumpfsegmenten (1–13). Gesichtsnähte (n) an den nie gestachelten Hinterecken beginnend, nach den mittelgrossen Augen (a) convergirend und von dort fast parallel über den Stirnrand nach der Unterseite laufend, wo sie durch eine quere Schnauzennaht (sn) vereinigt werden. Glabella mit deutlicher Nackenfurche und 3 kurzen Querfurchenpaaren (sf), welche gerundete Seitenlappen abtrennen. Achse (ax) sich langsam nach hinten verschmälernd. Schwanzschild (s) aus 6–11 Gliedern bestehend. Hypostom (hy) fast rechteckig, hinten ausgebuchtet. Vereinzelt im Cambrium, häufig im Unter- und Obersilur, seltener im Devon.
C. incerta Barr. Untersilur. Böhmen.
C. Tristani Brgt. Untersilur. Nordfrankreich, England.
C. senaria Conr. (Fig. 583 A). Untersilur. Nordamerika, England.
C. Blumenbachi Brgt. (Fig. 582). Selten im Unter-, sehr häufig im Obersilur. Europa, Nordamerika, Australien. Vielleicht noch im Devon. Als Diluvialgeschiebe in Norddeutschland.
C. tuberculosa Salt. (Fig. 583 B). Obersilur. England.
C. platys Green. Unterdevon. Nordamerika.
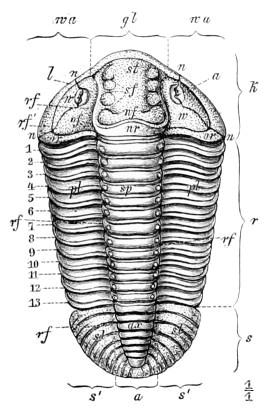
Fig. 582. Calymene Blumenbachi Brgt. Obersilur. Dudley. England.
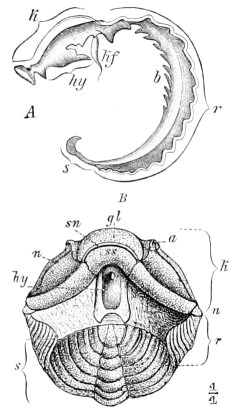
Fig. 583. Calymene (eingerollt). A Längsschnitt in der Richtung der Achse von C. senaria Conr. B C. tuberculosa Salt. mit dem Hypostom (hy) in natürlicher Lage. Obersilur. England.
Bezeichnungen siehe Fig. 571, 573, 574.
Homalonotus Koen. (Fig. 584). Von der vorigen Gattung durch bedeutendere Grösse (— 374 mm) und höhere Zahl der Schwanzschildglieder (10–14) unterschieden. Pleuren (pl) nicht sehr scharf von der breiteren Spindel (sp) geschieden. Kopfschild (k) mit grosser, glatter oder schwach gefurchter Glabella (gl). Gesichtsnähte (n) vor der Glabella spitzwinkelig zusammenstossend. Augen (a) klein. Selten im Untersilur, häufig im Obersilur und Unterdevon, selten im Mitteldevon (Europa, Amerika, Südafrika, Australien).
H. Brongniarti Desl. Untersilur. Nordfrankreich.
H. bisulcatus Salt. Untersilur. Grossbritannien.
H. delphinocephalus Green. (Fig. 584). Obersilur. Nordamerika, Grossbritannien.
H. Knighti Koen. Obersilur. Grossbritannien, Skandinavien.
H. crassicauda Sdb. Unterdevon. Rheinisches Schiefergebirge.
H. scabrosus Koch. Unterdevon. Rheinisches Schiefergebirge.
H. Dekayi Green. (Leth. pal., t. 25, Fig. 8). Devon (Hamilton-Gr.). Nordamerika.
H. obtusus Sdb. Mitteldevon (Wissenbacher Schiefer). Rheinisches Schiefergebirge.
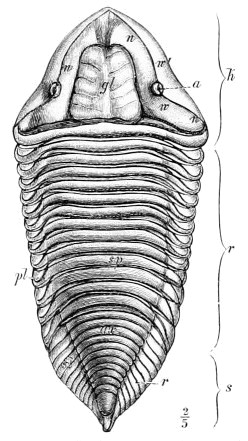
Fig. 584. Homalonotus delphinocephalus Green. Obersilur. Dudley, England. Bezeichnungen siehe Fig. 580, 581.
Asaphus Brgt. (Fig. 585). Mässig grosse bis sehr grosse, breite und platte Schalen mit meist grossem Kopf- (k) und etwa gleich grossem Schwanzschilde (s). Rumpf (r) aus 8 Segmenten bestehend. Kopfschild gerundet oder vorn und an den Hinterecken zugespitzt. Glabella (gl) oft wenig scharf getrennt, vorn verbreitert, meist ohne Seitenfurche. Augen (a) gross. Gesichtsnähte (n) am Hinterrand beginnend, nach den Augen zu convergirend, dann auseinander weichend. Pleuren (pl) mit schräg nach hinten gerichteter Furche (f). Die Gliederung des aus zahlreichen Segmenten bestehenden Schwanzschildes oft nur auf der Achse (ax), zuweilen auch dort nicht deutlich. Umschlag der Unterseite breit. Oberflächenverzierung in der Form von Streifen (s’) oder Falten und feinen Gruben. Hypostom mit tiefem Ausschnitt am Hinterrande. Zahlreiche Untergattungen. Selten im Cambrium, sehr häufig im Untersilur (Europa, Nordamerika).
A. tyrannus Murch. (Leth. pal., t. 7, Fig. 1). Untersilur. England.
A. gigas Dek. Untersilur. England, Nordamerika.
A. expansus L. sp. (Fig. 585). Leitfossil für die Orthoceren-(»Expansus-«) Schichten in Skandinavien und den russischen Ostseeprovinzen. Als Diluvialgeschiebe in Norddeutschland.
A. palpebrosus Ang.}Untersilur. Skandinavien, Ostseeprovinzen.
A. angustifrons Dalm.
Nahe verwandte Gattungen:
Ogygia Brgt. Glabella mit 4 Paar kurzen Seitenfurchen. Spindel und Achse relativ schmal. Schwanzschild aus zahlreichen, durch Rippen deutlich bezeichneten Segmenten zusammengesetzt. Nur im Untersilur Europas.
O. Buchi Brgt. (Leth. pal., t. 8, Fig. 6). Llandeilo flags. Grossbritannien.
O. desiderata Barr. Untersilur. Böhmen.
Nileus Dalm. Glabella, Spindel und Achse sehr breit. Nur der Rumpf deutlich segmentirt. Habituell der nächsten Gattung sehr ähnlich, aber mit gefurchten Pleuren. Untersilur (Skandinavien, Russland).
N. armadillo Dalm. (Leth. pal., t. 8, Fig. 3).
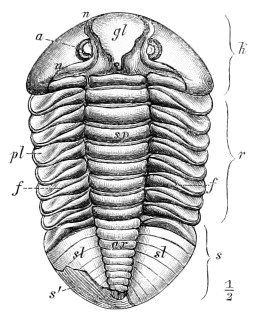
Fig. 585. Asaphus expansus Lin. sp. Untersilur. Christiania.
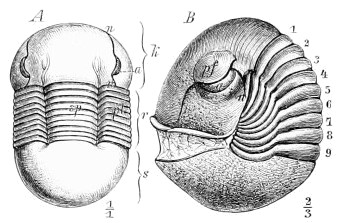
Fig. 586. A Illaenus angustifrons Holm. Untersilurisches Diluvialgeschiebe. Sadewitz, Schlesien. B Ill. (Bumastes) insignis Hall. Obersilur. England. Die eingerollte Schale hat nur 9 Rumpfsegmente.
Bezeichnungen: k = Kopfschild; r = Rumpf; s = Schwanzschild; gl = Glabella; a = Augen; n = Gesichtsnaht; pf = Palpebralflügel; sp = Spindel; pl = Pleuren; f = Furche derselben; ax = Achse; sl = Seitenlappen; s’ = Streifung auf dem Steinkern.
Illaenus Dalm. (Fig. 586). Grosse Schalen mit breitem, halbkreisförmigem, glattem Kopf- (k) und Schwanzschilde (s), auf welchen die Seitenfurchen nur schwach angedeutet oder fehlend. Augen (a) zur Seite gerückt. Gesichtsnaht vor denselben den Vorderrand überschreitend. Spindel breit. 10 oder 9, seltener 8 Rumpfsegmente mit glatten Pleuren (pl). Oberfläche mit Streifen und Punkten verziert. Hypostom mit gerundetem Hinterrande. Selten im Cambrium, häufig im Untersilur, weniger häufig im Obersilur (Europa, Nordamerika).
I. Bowmanni Salt. Untersilur. England.
I. angustifrons Holm. (Fig. 586 A).}Untersilur. Skandinavien, Russland.
I. Roemeri Volb.
I. crassicauda Dalm.
I. Katzeri Barr.}Untersilur. Böhmen.
I. Panderi Barr.
Spindel viel breiter als die Pleuren. Achse fehlt. Augen dem Aussenrande nahe — Bumastes.
I. (Bum.) Barriensis Murch. Obersilur. England, Skandinavien, Nordamerika.
I. (Bum.) insignis Hall. (Fig. 586 B). Obersilur. Nordamerika, Grossbritannien.
Phacops Emmr. (Fig. 587, 588). Der regelmässig dreilappige Körper besitzt stets 11 Rumpfsegmente und eine wechselnde, aber im Allgemeinen erhebliche Zahl von Schwanzsegmenten. Oberfläche häufig gekörnelt. Glabella (gl) meist deutlich von den Wangen getrennt, vorn verbreitert, mit einer wechselnden Zahl von Seitenfurchen (sf). Gesichtsnähte (n) am Seitenrand beginnend, vor der Glabella sich bogenförmig vereinigend. Augen gross, höckerig (Fig. 587 B); Linsen (l) die Hornhaut (h) durchbrechend. Pleuren mit gebogener Furche. Schwanzschild gerundet, in einen Stachel (st) ausgezogen oder gekerbt; die letzten Furchen der Seitenlappen fast parallel der Achse gestellt. Mehrere Untergattungen, wie Chasmops, Dalmania, Cryphaeus etc. Untersilur — Oberdevon. Zahlreiche Arten über die ganze Erde verbreitet.
Ph. (Dalm.) socialis Barr. Untersilur. Böhmen.
Ph. (Chasm.) macrura Ang. Leitend für den untersilurischen Backstein- oder Chasmops-Kalk. Häufig als Diluvialgeschiebe in Norddeutschland.
Ph. (Chasm.) conicophthalmus S. & B. sp. Untersilur. Skandinavien (Diluvialgeschiebe).
Ph. fecundus Barr. Obersilur und Unterdevon. Europa, Australien.
Ph. (Dalm.) caudatus Brünn sp. (Fig. 588). Obersilur. Europa, Nordamerika, Australien.
Ph. (Dalm.) Hausmanni Brgt. Devon (Silur G.) Böhmen.
Ph. (Cryph.) stellifer Burm. Unter- und Mitteldevon. Europa.
Ph. (Cryph.) laciniatus Rö. (Leth. pal., t. 25, Fig. 10). Unterdevon. Rheinisches Schiefergebirge, Harz.
Ph. (Cryph.) calliteles Green. Unterdevon. Europa, Nordamerika (Hamilton Gr.).
Ph. latifrons Br. (Fig. 587). Devon. Europa.
Ph. bufo Green. Devon. Nordamerika.
Ph. cryptophthalmus Emmr. (Leth. pal., t. 35, Fig. 18). Oberdevon. Europa.
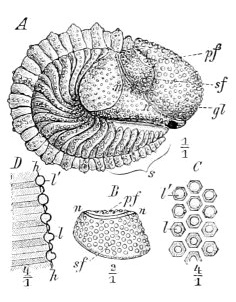
Fig. 587. A Phacops latifrons Br. Mitteldevon. Eifel. B–D Auge von Phacops. (Vgl. Fig. 573).
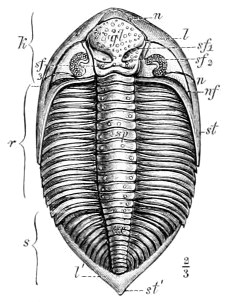
Fig. 588. Phacops (Dalmania) caudatus Brünn. sp. Obersilur. Dudley, England.
Bezeichnungen: k = Kopfschild; r = Rumpf; s = Schwanzschild; gl = Glabella; sf = Seitenfurchen; n = Gesichtsnaht; l = Randsaum des Kopfschildes, l’ = des Schwanzschildes; pf = Palpebralflügel; sf = Sehfläche; st = Wangenstachel; sp = Spindel; ax = Achse; h = Hornhaut.
Cheirurus Beyr. (= Ceraurus — Fig. 589). Anzahl der Rumpfsegmente (meist 11) und Verlauf der Gesichtsnähte wie bei der vorigen Gattung. Glabella den Stirnrand überragend. Schwanzschild klein, aus nur 4 Segmenten bestehend. 3 Paare von Seitenfurchen, deren letzteres gegen innen nach rückwärts gebogen einen ovalen Seitenlappen abschnürt. Pleuren in Spitzen ausgezogen, Schwanzschild gelappt. Vom Cambrium bis ins Mitteldevon in Europa, Nordamerika, Asien, Australien.
Ch. clavifrons Dalm. sp. Untersilur. Skandinavien, Russland.
Ch. exsul Beyr. Untersilur. Skandinavien, Russland.
Ch. claviger Beyr. Untersilur. Böhmen.
Ch. insignis Beyr. (Leth. pal., t. 17, Fig. 10). Obersilur. Böhmen, Schweden, England.
Ch. Sternbergi Boeck. Obersilur und Devon. Böhmen.
Ch. gibbus Beyr. (Fig. 589). Devon (Silur F, G). Böhmen.
Sphaerexochus Beyr. unterscheidet sich durch sehr stark gewölbtes Kopfschild, breite Glabella und schmale Wangen. 10 Rumpfsegmente. Silur.
Sph. mirus Beyr. Obersilur. Böhmen, England.
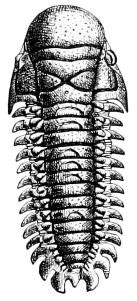
Fig. 589. Cheirurus gibbus Beyr. Devon (Silur G). Böhmen. ²⁄₁.
Proëtus Stein. (Leth. pal., t. 31, Fig. 3). Kleine, ovale Formen mit eiförmiger oder vorn verschmälerter Glabella, Seitenfurchen schwach oder fehlend. Gesichtsnaht am Hinterrand beginnend und den Stirnrand überschreitend, wie bei Phillipsia (Fig. 590). 8–10 Rumpfsegmente. Grosse, halbmondförmige Augen. Schwanzschild aus 13 Segmenten bestehend. Untersilur — Subcarbon, hauptsächlich im Devon (Europa, Nordamerika, Australien).
Pr. elegantulus Ang. Obersilur. Skandinavien.
Pr. latifrons M’Coy sp. Obersilur. England.
Pr. Stockesi Murch. Obersilur. England, Nordamerika.
Pr. Cuvieri Stein. Mitteldevon. Eifel.
Pr. bufo M. & W. Devon (Hamilton Gr.). Nordamerika.
Phillipsia (Fig. 590). Von der vorigen Gattung durch die zahlreichen (12–18) Segmente des Schwanzschildes (s) und durch die abgeschnürten Hinterlappen der Glabella (x) unterschieden. 9–10 Rumpfsegmente. Oberfläche meist gekörnelt. Devon — Perm, hauptsächlich im Subcarbon. (Europa, Ural, Nordamerika).
Ph. Verneuili Barr. Mitteldevon. Rheinisches Schiefergebirge, Böhmen, Ural.
Ph. globiceps Phill. sp.}Subcarbon. Europa.
Ph. gemmulifera Phill. sp. (Fig. 590).
Ph. Derbiensis Mart. sp.
Bronteus Gf. (Fig. 591). Kopfschild wenig kleiner als der aus 10 Segmenten bestehende Rumpf, letzterer kleiner als das parabolische Schwanzschild. Vorderer Theil der Glabella stark erweitert. Seitenfurchen undeutlich. Augen gross. Gesichtsnähte am Hinterrand beginnend, auf der Unterseite sich vereinigend. Pleuren wulstförmig. Von der sehr kurzen, meist unsegmentirten Achse strahlen 7–9 Furchenpaare in radialer Richtung aus. Untersilur — Oberdevon, hauptsächlich im Devon.
Br. planus Corda (Fig. 591). Obersilur. Böhmen.
Br. palifer Beyr.}Devon (Silur F–H). Böhmen.
Br. campanifer Beyr.
Br. thysanopeltis Barr. Devon. Böhmen, Mitteldeutschland.
Br. flabellifer Gf. (Leth. pal., t. 31, Fig. 5). Mitteldevon. Eifel, England.
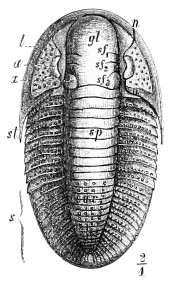
Fig. 590. Phillipsia gemmulifera Phill. sp. Subcarbon. Kildare. Irland.
Fig. 591. Bronteus planus Cord. Obersilur. Böhmen. ⅔.
Bezeichnungen: s = Schwanzschild; ax = Achse; sp = Spindel; gl = Glabella; sf1–sf3 = Seitenfurchen; x = hinterer Seitenlappen; n = Gesichtsnaht; a = Auge; l = Randsaum; st = Wangenstachel.
Lichas Dalm. Kopfschild breit und wenig hoch, kleiner als der aus 9 oder 10 Segmenten bestehende Rumpf. Seitenfurchen der Glabella sehr unregelmässig, meist nach rückwärts verlaufend, mehrere ovale oder kreisrunde Lappen von einander sondernd. Schwanzschild nach hinten verschmälert. Achse kurz, mit wenig Gliedern. Seitentheile mit radialen Furchen. Silur, seltener im Devon (Europa, Nordamerika).
L. coelorhin Ang. Untersilur. Skandinavien, Russland.
L. laxata M’Coy sp. Obersilur. Skandinavien, Russland, Grossbritannien.
L. scabra Beyr. (Leth, pal., t. 17. Fig. 6).}Obersilur. Böhmen.
L. palmata Barr.
L. Boltoni Bigsb. sp. Obersilur. Nordamerika.
Geologische Verbreitung der Trilobitae.
Die Trilobiten gehören mit zu den ältesten bisher bekannt gewordenen Fossilien. Bereits im Cambrium treffen wir auf eine grosse Anzahl (ca. 50) verschiedener Formenkreise, die z. Th. eine sehr weite horizontale Verbreitung besitzen (Agnostus, Olenus, Paradoxides) und für die Gliederung dieser Formation als brauchbare Leitfossilien Verwendung finden. Ein grosser Theil der silurischen Gattungen ist bereits im Cambrium vorhanden, aber erst zur Zeit des Untersilur erreichen die Trilobiten ihre hauptsächlichste Entwickelung, wie namentlich in den formenreichen Gattungen Calymene, Asaphus, Illaenus, Lichas, Cheirurus, Phacops. Im Obersilur sind manche Formenkreise bereits ausgestorben, andere wie Phacops, Bronteus, Proëtus, Harpes erlangen hier und z. Th. auch im Devon ihre grösste Entwickelung. Die Zahl der devonischen Formen ist gering gegenüber den älteren und nur einige Gattungen, wie Proëtus, Phillipsia erreichen die Steinkohlenformation, z. Th. (Phillipsia) sogar das Perm. Manche Gattungen verschwinden in Europa, wie es scheint, früher als in Nordamerika, z. B. Calymene, Lichas.
Zur bequemeren Uebersicht der geologischen Verbreitung der wichtigsten Gattungen möge nachstehende Tabelle dienen:
GattungCambriumUntersilurObersilurDevonSteinkohlenformationPerm
Agnostus—....
Trinucleus—
Olenus—
Paradoxides—
Conocephalus—....
Calymene——....
Homalonotus....——
Asaphus—
Ogygia—
Illaenus—....
Phacops....——
Cheirurus——....
Proëtus....——....
Phillipsia....—....
Bronteus....——
Lichas——
Nach allem, was wir über die Trilobiten wissen, müssen wir annehmen, dass sie eine sehr einfach organisirte und noch wenig entwickelte Abtheilung der Crustaceen gewesen sind. Ihr Verschwinden ist z. Th. wohl nur ein scheinbares, denn wir treffen bei verschiedenen jetzt noch lebenden Crustaceen-Abtheilungen gewisse Trilobiten-Merkmale wieder, welche kaum anders als durch Vererbung erklärt werden können. Mit den Xiphosura und manchen Isopoda haben die Trilobiten die Dreitheilung des Körpers der Länge nach, sowie die Beschaffenheit der Augen gemeinsam. Die wechselnde Anzahl der beweglichen Segmente und eine dem Hypostom der Trilobiten entsprechende Oberlippe kennt man von den lebenden Phyllopoden, deren Panzer aber mehr nach Art gewisser Euostraca und Entomostraca gebaut ist. Ausgezeichnete Uebergangsformen kennen wir bis jetzt nur zu den Xiphosura, welche jedenfalls als die nächsten, weil am wenigsten modificirten Verwandten der Trilobiten angesehen werden müssen.
2. Unterordnung Xiphosura (Schwertschwänze).
Litteratur über Xiphosura und Gigantostraca.
Hall, James. Natural History of New-York. Palaeontology vol. III 1859.
Packard, A. S. The Anatomy, Histology and Embryology of Limulus polyphemus. Anniversary Memoirs of the Boston Soc. of nat. hist. 1880.
Schmidt, Fr. Miscellanea Silurica III. Die Crustaceenfauna der Eurypterusschichten von Rootziküll auf Oesel. Mém. de l’Acad. impér. de St. Pétersbourg. 7ᵉ sér. Vol. XXXI 1883.
Woodward, H. A. Monograph of British fossil Crustacea belonging to the order Merostomata. Palaeontographical Society Part I–V 1866–1878.
Der Panzer der Xiphosuren lässt sowohl der Länge wie der Quere nach eine Dreitheilung erkennen. Das Kopfschild ist sehr gross und zumeist breiter als der übrige Körper, der Rumpf besteht aus einer geringen Zahl (5 oder 6) beweglicher Segmente, die bei den jüngeren Formen mit 2 Segmenten des Schwanzschildes zu einem Brustschwanzschilde verschmolzen sind. Das letzte oder die letzten Glieder des Schwanzschildes sind zu einem beweglichen Stachel umgewandelt. Gesichtsnaht zuweilen vorhanden. Ausser den grossen, seitlichen Trilobitenaugen zuweilen kleine, mediane Nebenaugen vorhanden. Die paläozoischen Vertreter der Xiphosuren schliessen sich enge an gewisse Trilobiten, z. B. an die untersilurische Gattung Trinucleus (Fig. 578) an. Als Beispiel hierfür möge die Gattung
Belinurus Koen. (Fig. 592) erwähnt werden. Das breite Kopfschild (k) zeigt einen breiten Randsaum, Wangenstacheln (st) und deutliche Dreitheilung, wie dasjenige von Trinucleus. Eine hart innerhalb der Trilobiten-Augen (a) auftretende Kante entspricht vielleicht der Gesichtsnaht. Rumpf (r) aus 5 beweglichen Segmenten bestehend. Spindel (sp) deutlich von den gefurchten und in Spitzen verlängerten Pleuren abgesetzt. Schwanzschild (s) aus 3 verwachsenen Segmenten und einem beweglichen, langen Endstachel (Telson — t) bestehend. Mehrere Arten im Devon Grossbritanniens und im Carbon Grossbritanniens, Belgiens und Oberschlesiens.
B. reginae Bail. (Fig. 592). Carbon. Irland.
Eine Anzahl verwandter Gattungen sind vom Obersilur an bis zur Steinkohlenformation bekannt. Sie vermitteln z. Th. den Uebergang von den Trilobiten zu der im Mesozoicum und Känozoicum verbreiteten Gattung.
Fig. 592. Belinurus reginae Bail. Carbon. Irland.
Limulus Walchi Desm. Oberer Malm. Solenhofen, Franken. Links: von der Unterseite. Rechts: von der Oberseite. [NB. Es sind anstatt 6 beweglicher Stacheln des Mittelleibes irrthümlich 5 und 7 gezeichnet!] B Limulus polyphemus Latr. Larve im Trilobiten-Stadium.
Bezeichnungen: k = Kopfschild; r = Rumpf; s = Schwanzschild; gl = Glabella; a = Auge; o = Nebenaugen; w = Wange; l = Randsaum; l’ = Lippe; x = Umschlag der Unterseite; st = Wangenstachel; f = Füsse; sp = Spindel: pl = Pleuren; sl’ = Pleurenstacheln; t = Endstachel (Telson).
Limulus Müll. (Fig. 593). Der Panzer zerfällt der Länge nach in ein Kopfschild (k), ein Brustschild (r) und einen Schwanzstachel (s). Das grosse, breite Kopfschild bildet einen breiten Umschlag auf der Unterseite (x, l’); die gewölbte Glabella (gl) ist durch 2 Furchen seitlich begrenzt. Eine Kante, an deren äusserer Abdachung die Trilobiten-Augen (a) liegen, theilt die Wangen (w) in 2 Theile. Am Vorderrande der Glabella 2 kleine Nebenaugen (Ocelli — B o). Die Anhänge des Kopfschildes bestehen aus einem kleinen, präoralen, in Scheeren endigenden Fühlerpaar. Darauf folgen 5 Paare, ebenfalls in Scheeren endigender Füsse (f), deren Coxalglieder zumeist zu Kauwerkzeugen umgestaltet sind. Das fünfte besitzt einen äusseren Anhang (Exopodit). Ein siebentes Anhangspaar (Deckel) ist zu einer gegliederten Platte verwachsen, welche die Blattanhänge des Mittelleibes bedeckt. Die Mittelleibsplatte (Brustschwanz) enthält die bei Belinurus und im Larvenstadium von Limulus (B) noch geschiedenen Segmente des Rumpfes und z. Th. (2) des Schwanzschildes. 5, aus verwachsenen Gliedmaassenpaaren gebildete Blattfüsse und 6 Paar beweglicher Stacheln (st’) vorhanden. Eine Theilung in Spindel (sp) und Pleuren (pl) bei der Larve (B), aber auch im ausgewachsenen Zustande noch deutlich. Die besonders durch die Verschmelzung der Rumpfsegmente unter einander und zweier Schwanzschildsegmente zu einem Telson gekennzeichnete Gattung ist von der Trias an bekannt. Lebend im Seichtwasser im atlantischen und pacifischen Ocean.
L. Bronni Schpr. Oberer Buntsandstein. Elsass.
L. Walchi Desm. (Fig. 593 A). Oberer Malm. Franken.
L. Syriacus Woodw. Obere Kreide. Libanon.
L. polyphemus L. (Fig. 593 B). Lebend. Ostküste Nordamerikas, Japan, Sundainseln, Molukken.
Die Xiphosura stellen sich als ein kleiner Zweig des Trilobitenstammes dar, dessen lebender Vertreter noch zahlreiche Trilobitenmerkmale, die Dreitheilung des Panzers der Länge nach, die Lage und Beschaffenheit der Augen, die gleichartige Ausbildung der Kopfschildanhänge, den Umschlag des Kopfschildes und die geringe Entwickelung der präoralen Anhänge bewahrt hat. Die Zahl der Fusspaare und das Auftreten von Nebenaugen theilen die Xiphosura mit den Gigantostraca.
3. Unterordnung Gigantostraca (Riesenkrebse).
Nur aus paläozoischen Schichten bekannte, bis 1,5 m grosse Krebse mit langgestrecktem Körper. Kopfschild klein, nicht segmentirt, mit 6 Anhangspaaren, 2 grossen Trilobitenaugen und 2 kleinen Nebenaugen. Rumpf aus 6 beweglichen Segmenten, deren kurze Anhänge als Kiemen fungiren. Hinterleib aus 6 beweglichen, anhangslosen Segmenten und einem abweichend gestalteten, beweglichen Endgliede bestehend. Vom Untersilur bis ins Carbon verbreitet. Häufig sind besonders die 2 folgenden Gattungen:
Eurypterus Dek. (Fig. 594). Kopfschild (k) flach gewölbt, vierseitig, mit abgerundeten Vorderecken, auf der Unterseite einen breiten Umschlag bildend (B). Zwei grosse, nierenförmige, unfacettirte, dem Aussenrande genäherte Augen (a) und ein Paar kleinere, mediane Punktaugen (o). Ein sehr kleines, präorales Antennenpaar (auf der Zeichnung nicht angegeben) vor dem spaltförmigen Munde. Um denselben herum 5, den Körper z. Th. weit überragende, gegliederte Fusspaare (f2–f6). Ihre Coxalglieder dienen als Kauorgane; diejenigen des letzten Fusspaares sind zu breiten Platten (k’) umgestaltet und schliessen eine einfache Mittelplatte (Metastoma — m) ein. 6 Segmente (1–6) mit kurzem Bauchumschlag bedecken den Rumpf (r) auf der Rückenseite, während auf der Bauchseite 5 Paare von Blattfüssen auftreten, welche in ähnlicher Weise wie bei Limulus dachziegelförmig übereinander greifen und die Kiemen bedecken. Das erste Paar (B b1–b2) (»Deckel«) entspricht seiner Lage nach den beiden ersten Rückensegmenten (1, 2); es wird durch eine Quernaht in 2 Stücke (b1, b2) getheilt. Kleinere Zwischenplatten (z) bedecken die Mittelspalte. Der Hinterleib (s) wird von 6 Panzerringen umschlossen und endigt in einen langen Endstachel (t). Rumpf und Hinterleib zeigen eine schwache Dreitheilung der Länge nach. Die Körperoberfläche ist z. Th. fein beschuppt.
Fig. 594. Eurypterus Fischeri Eichw. Obersilur. Oesel. A von der Oberseite. B Kopf von der Unterseite.
Fig. 595. A Pterygotus anglicus Ag. Devon. Schottland. Ansicht der Rückenseite. B Pt. osiliensis Schm. Obersilur. Oesel. Kopf von der Unterseite.
Bezeichnungen: k = Kopfschild; r = Rumpf; s = Schwanz; a = Augen; o = Nebenaugen; f1–f6 = Anhänge des Kopfschildes; s, s’ = Scheerenglieder; 1–6 = Brustglieder; 7–13 = Schwanzglieder; t = Endglied; ep = Epistom; k’ = Kauplatte des sechsten Fusspaares; m = Metastom; b1–b2 = Deckel; z = Zwischenplatten; n = Mittelnaht.
Diese Gattung kommt in zahlreichen Arten vom Obersilur bis ins Carbon vor. Besonders reich haben sich die obersten Silurschichten der russischen Ostseeprovinzen, Englands und Nordamerikas, sowie die Steinkohlenformation in Europa und Nordamerika erwiesen.
E. Fischeri Eichw. (Fig. 595). Obersilur. Russische Ostseeprovinzen, Gotland.
E. remipes Dck. Obersilur. (Waterlime Gr.). Nordamerika.
E. punctatus Salt. sp. Obersilur. Grossbritannien.
E. Scouleri Hibb. Steinkohlenformation. Schottland, Niederschlesien.
Pterygotus Ag. (Fig. 595) unterscheidet sich hauptsächlich durch die Facettirung und randliche Lage der Augen (a), die starke Entwickelung des (scheerentragenden s’) Antennenpaares (f1), die flossenartige Gestalt des Endgliedes (t), ferner durch gröbere Beschuppung und beträchtlichere Grösse. Der Stirnumschlag hebt sich als getrennte Platte (Epistom — B ep) ab. Untersilur — Devon in Europa und Nordamerika; hauptsächlich im Obersilur.
Pt. osiliensis Schm. (Fig. 595 B). Obersilur. Russische Ostseeprovinzen.
Pt. anglicus Ag. (Fig. 595 A). Devon (Old red). Schottland.
Wie aus der vorhergehenden Darstellung ersichtlich ist, bestehen beträchtliche Uebereinstimmungen zwischen Limulus und den Gigantostraca, namentlich in Zahl und Gestalt der Anhänge und z. Th. des Endgliedes. Andrerseits erinnert die ganze Gliederung des Körpers, die Scheerenform der Fühler bei Pterygotus und der Endstachel bei Eurypterus auffallend an die Scorpione, deren paläozoische Vertreter Wasserbewohner waren.
B. Euostraca.
4. Unterordnung Phyllopoda und 5. Unterordnung Leptostraca (Phyllocarida).
Litteratur über Phyllopoda und Leptostraca.
Beecher, Ch. Ceratiocaridae from the Chemung and Waverly Groups. Rep. of Progress P. P. P., sec. geol. Survey of Pennsylvania. 1884.
Clarke, J. M. American journ. of Science 1882 3. ser. vol. XXIII p. 476 u. 1883 vol. XXV p. 120.
Jones, Rup. A Monograph of the fossil Estheriae. Palaeont. Soc. 1862.
Packard, A. S. A Monograph of the Phyllopod Crustacea of N. America, with remarks on the order Phyllocarida. 12ᵗʰ Ann. Rep. of the U. S. geol. and geogr. Surv. of the Territories. Part. I 1883.
Salter, J. Memoirs of the Geological Survey of Great Britain. 1886 vol. III.
Bezeichnend für diese beiden Unterordnungen ist neben der schwankenden Zahl der Körpersegmente das häufige Auftreten eines nicht segmentirten Kopfrumpfschildes, welches einfach oder in der Rückenlinie getheilt ist, und den Kopf und einen Theil des Rumpfes oder (selten) den ganzen Körper einschliesst. Dazu gesellt sich oft noch ein vorderes bewegliches Stück (Rostrum). Die fossilen Reste sind wenig zahlreich und z. Th. nicht mit Sicherheit zu deuten; sie werden schon in cambrischen Ablagerungen gefunden. Unter der Bezeichnung
Phyllocarida
fasst man vorwiegend paläozoische Reste zusammen, die, wie beispielsweise die Gattung
Echinocaris Witf. (Fig. 596) ein einfaches, den Kopf und einen Theil des Leibes bedeckendes, in der Mittelebene nicht getheiltes Kopfrumpfschild (c) und dahinter ein gegliedertes Abdomen (ab) erkennen lassen. Letzteres endigt in einem gespaltenen Endgliede (t). Eine gebogene Linie (l) scheint die Grenze zwischen dem Kopfschilde und dem Rumpfe anzudeuten. Augenflecke (a) und mehrere Höcker auf dem Kopftheile; eine Längsleiste (r) bezeichnet vielleicht die ursprüngliche Grenze zwischen Spindel und Pleuren. Devon. Nordamerika.
Andere Gattungen wie Ceratiocaris M’Coy führen ein bewegliches Rostrum. Dasselbe findet sich auch bei der lebenden Gattung Nebalia.
Ob die zweiklappigen Reste des Paläozoicums mit vorderem, dreieckigem, oft durch eine Rostralplatte ausgefülltem Ausschnitt hierher zu stellen sind (Peltocaris, Cardiocaris) oder als den Aptychen (p. 385) ähnliche Gebilde aufgefasst werden müssen, bleibt z. Z. noch zweifelhaft.
Fig. 596. Echinocaris punctata Hall. sp. Devon (Hamilton-Gr.). Nordamerika. Der Panzer ausgebreitet. c = Kopfrumpfschild; l = Trennungslinie zwischen Kopf und Rumpf: a = Augenflecke; r = Längsleiste des Rumpfschildes; ab = Hinterleib mit 6 Segmenten (1–6) und einem dreistacheligen Endgliede (t).
Fig. 597. Estheria minuta Alb. sp. Unterer Keuper (Lettenkohle). Sinsheim, Baden. A eine Klappe von der Seite. r = Rückenrand; c = Zuwachsstreifen. B vergrösserte Oberfläche der Schale. m = Maschenstructur zwischen den Zuwachsstreifen (c).
An die heutigen
Phyllopoda
schliessen sich Formen wie
Estheria Rüpp. (Fig. 597) an. Die Schale ist zweiklappig und umhüllt den segmentirten Körper vollständig. Der Rückenrand der Klappe (r) ist gerade; die Oberfläche mit concentrischen Zuwachsstreifen (c) verziert, zwischen welchen die Schale eine maschige Structur (m) erkennen lässt (Unterscheidungsmerkmal von den zuweilen sehr ähnlichen Muschelschalen, z. B. Posidonomya — p. 239).
Vom Devon an bekannt. Lebend häufig in wärmeren Regionen im Süsswasser. Die ältesten Formen haben im Meerwasser (zusammen mit Lingula) gelebt.
E. membranacea Pacht. sp. Devon. Grossbritannien, Russland.
E. striata Mnstr. Subcarbon. Deutschland, Belgien, Grossbritannien.
E. minuta Alb. sp. (Fig. 597). Häufig und weit verbreitet in der Trias von Deutschland, Frankreich und England.
Die Phyllocarida sind eine sehr alte Crustaceengruppe, als deren nächste Verwandte die lebenden Nebaliadae angesehen werden müssen. Das Zooea-Stadium der Larven der höheren Krebse weist eine auffallende habituelle Aehnlichkeit mit denselben auf.
Die zweiklappige Schale der Phyllopoda lässt auf nahe Beziehungen zu den Entomostraca schliessen, während der zumeist sehr deutlich gegliederte anhangsreiche Körper sie in die Nähe der Euostraca verweist.
6. Unterordnung Malacostraca.
Der Körper besitzt eine constante Zahl von Segmenten (20) und Gliedmaassenpaaren (19). Kopf und Rumpf tragen 13 Anhangspaare, der Hinterleib 6. Das erste, seltener die beiden ersten Rumpfsegmente mit dem Kopfe verschmolzen. Man unterscheidet 2 Abtheilungen:
a. Arthrostraca (Ringelkrebse). Meist 7, selten 6 oder weniger gesonderte Rumpfsegmente. Augen seitlich, sitzend.
b. Thoracostraca (Panzerkrebse). Einige oder alle Rumpfsegmente mit dem Kopfe verschmolzen und gewöhnlich von einem massiven Kopfbrustschilde bedeckt. Augen meist gestielt und beweglich.
a. Arthrostraca.
Diese zerfallen in die beiden Abtheilungen der
1. Isopoda (Asseln) mit niedergedrücktem, flachem Körper, ohne Springbeine am Hinterleibe.
2. Amphipoda (Flohkrebse) mit seitlich zusammengedrücktem Hinterleibe und 3 Paar Springbeinen an den letzten Segmenten. Beide sind fossil bekannt.
1. Isopoda.
Litteratur über Isopoda.
Ammon, L. von. Ein Beitrag zur Kenntniss der fossilen Asseln. Sitzungsber. d. bayer. Akad. Math.-phys. Classe 1882 S. 507.
Die Isopoda sind Meeres-, seltener Süsswasser- oder Landbewohner. Die grössten Formen werden bis 23 cm lang. Das Kopfschild ist meist klein, trägt sitzende Augen, wie dasjenige der Trilobiten, und wird häufig von den ersten Rumpfsegmenten seitlich umfasst (Fig. 598). 7, seltener 6 bewegliche Rumpfsegmente, die oft eine Theilung in Spindel (sp) und Pleuren (hier Epimeren genannt — pl) erkennen lassen. Die Pleuren zuweilen gefurcht wie bei den Trilobiten. Einige Segmente des Hinterleibes (1–3) frei; die letzten oft zu einem Schwanzschilde (s) verwachsen. Manche Formen können sich nach Art der Trilobiten einrollen. Der ganze Bau des Körpers lässt eine mehr als habituelle Aehnlichkeit mit den Trilobiten erkennen. Das gilt besonders von der auf der südlichen Halbkugel von der Strandzone an bis zur Tiefe von mehr als 2000 Faden verbreiteten Gattung Serolis (Fig. 598), welche die Trilobitendreitheilung des Rumpfes, die Pleurenfurchen, die Lichas-ähnlichen Höcker des Kopfschildes und die ebenfalls Lichas-artige, radiale Anordnung der (4) Schwanzschildsegmente bewahrt zu haben scheint.
Die seit der Jurazeit bekannten fossilen Formen schliessen sich enge an die lebenden an. In der Steinkohlenformation Deutschlands und Englands ist aber eine Gattung (Arthropleura Jord.) gefunden worden, welche durch ihre beträchtlichen Dimensionen sowie die Gleichartigkeit der Fusspaare am Mittel- und Hinterleibe eine vermittelnde Stellung nach den Trilobiten hin einnimmt.
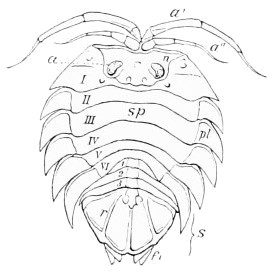
Fig. 598. Serolis paradoxa Fab. Punta Arenas. Magellanstrasse. Ansicht der Rückenseite. Das Kopfschild ist von dem ersten Rumpfsegmente durch eine Naht (n) getrennt; a = Augen; a’ = erstes, a’’ = zweites Fühlerpaar; I–VI = die ersten 6 Rumpfsegmente (das siebente nur von der Unterseite sichtbar); sp = Spindel; pl = Pleuren (Epimeren), auf den ersten Segmenten abgegliedert; 1–3 = die ersten 3 (freien) Hinterleibssegmente; s = Schwanzschild mit radial angeordneten Segmenten (r); f1 = das letzte (sechste) Anhangspaar des Hinterleibes. ¹⁄₁.
Fig. 599. Gampsonyx fimbriatus Jord. Unteres Rothliegendes. Lebach b. Saarbrücken. i = erstes, a = zweites Antennenpaar; I = erstes, II = zweites Fusspaar der freien Rumpfsegmente; t = letztes Körpersegment, zwei flossenartige Anhänge (f) tragend.
2. Amphipoda.
Fossile Vertreter dieser Abtheilung sind selten. Die Steinkohlenformation und das Perm haben einige Reste geliefert, unter denen die Gattung
Gampsonyx Jord. (Fig. 599) die bekannteste ist. Das erste Antennenpaar (i) ist kürzer als das zweite (äussere — a), welches sich zu einem langen Fühlfaden verlängert. Rumpf und Hinterleib bestehen aus 14 Segmenten und einem mit flossenartigen Anhängen (f) versehenen Endgliede (t). Das Fusspaar des ersten freien Rumpfsegmentes (I) überragt die übrigen an Grösse. Perm.
G. fimbriatus Jord. (Fig. 599). Unteres Rothliegendes. Saargebiet, Schwarzwald, Böhmen.
Verwandte Gattungen in der Steinkohlenformation Englands und Nordamerikas.
b. Thoracostraca.
Litteratur über Thoracostraca.
Bell, Th. A Monograph of the fossil Malacostracous Crustacea of Great-Britain. Palaeontogr. Soc. Part. I, Crustac. of the London clay. 1857. Part II, Crust. of the Gault and Greensand. 1862.
Bittner, A. Die Brachyuren des Vicentinischen Tertiärgebirges. Denkschriften der k. k. Akad. Wien 1857 Bd. XXXIV u. 1883 Bd. XLVI.
Huxley, Th. Der Krebs. Eine Einleitung in das Studium der Zoologie. Leipzig 1881.
Meyer, H. v. Neue Gattungen fossiler Krebse aus Gebilden vom bunten Sandstein bis in die Kreide. Stuttgart 1840.
—— Jurassische u. Triasische Crustaceen. Palaeontographica 1854. Vol. IV p. 44–55.
—— Die Prosoponiden oder Familie der Maskenkrebse. Palaeontographica 1860. Vol. VII.
Milne-Edwards, A. Hist. des Crustacés podophthalmaires fossiles. I. Portuniens et Thalassiens. Ann. des Sciences nat. Zoologie 4ᵉ sér. tome XIV 1871. II. Cancériens. ibid. 4ᵉ sér. tome XVIII 1862, XX 1863; 5ᵉ sér. tome I 1864, III 1865.
Oppel, A. Paläont. Mittheilungen aus dem Museum des k. bayer. Staates. I. Ueber jurassische Crustaceen. Stuttgart 1862.
Reuss, A. Zur Kenntniss fossiler Krabben. Denkschr. d. k. k. Akad. Wien 1857. Bd. XVII.
Von den 4 Gruppen, welche man bei den heutigen Schalenkrebsen unterscheidet: Cumacea, Stomatopoda, Schizopoda und Decapoda ist nur die letztere fossil häufig.
Decapoda (Zehnfüssler).
Die Segmente des Kopfes und zumeist auch alle Rumpfsegmente sind mit dem grossen Kopfbrustschilde verwachsen. 10, theilweise mit Scheeren bewaffnete Gehfüsse vorhanden. Schon in paläozoischen Formationen (Devon) vorhanden, aber erst im Mesozoicum und Känozoicum häufig. Sie zerfallen in:
1. Macrura (Langschwänze) mit stark entwickeltem Hinterleibe und breiter Schwanzflosse (Fig. 600, 601).
2. Brachyura (Kurzschwänze) mit kurzem, verschmälertem, gegen die Brust umgeschlagenem Hinterleibe, ohne Schwanzflosse (Fig. 603).
1. Macrura.
Zur Illustration dieser in mesozoischen Schichten sehr reichlich vertretenen Abtheilung führen wir folgende 2 Gattungen an:
Pemphix v. Mey. (Fig. 600). Der mit Körnern verzierte Cephalothorax wird durch eine tiefe Nackenfurche (nf) getheilt. Zwei weitere Furchen scheiden eine Herz- (x) und Leberregion (y) ab. Innere Antenne (a1) kurz, äussere (a2) lang. Das erste Fusspaar (f1) am stärksten. Hinterleib verhältnissmässig lang; letztes Glied hinten gerundet, mit 2 Paar flossenartiger Anhänge (f). Muschelkalk.
P. Sueuri Desm. sp. (Fig. 600). Oberer Muschelkalk. Süddeutschland, Schweiz, Lothringen.
Eryon Desm. (Fig. 601). Cephalothorax (kb) breit, gerundet, mit seitlichen Einschnitten (e). Hinterleib (ab) kurz. Endglied (t) zwischen den Schwimmfüssen des vorhergehenden Gliedes (ah) gelegen. Anhänge der Kopfbrust ähnlich wie bei Pemphix. Jura und (seltener) Kreide.
E. Hartmanni v. Mey. Oberer Lias (ε). Württemberg.
E. propinquus Schl. sp. (Fig. 601).}Oberer Malm. Franken.
E. arctiformis Schl. sp.
Hierher gehören zahlreiche andere Gattungen, von denen einige bereits im Devon und in der Steinkohlenformation, die meisten aber im Jura und in der Trias vorkommen. Alle waren Meeresbewohner. Wenige tertiäre Formen, z. Th. aus Süsswasserbildungen bekannt. Die meisten lebenden Vertreter leben im Meere, wie Homarus (Hummer), nur wenige, wie Astacus (Flusskrebs) im Süsswasser.
Fig. 600. Pemphix Sueuri Desm. sp. Muschelkalk. Crailsheim, Württemberg. (Ergänzt.) Ansicht der Rückenseite.
Fig. 601.
Eryon propinquus
Schl. sp. Oberer Malm. Solenhofen, Franken. Ansicht der Unterseite.
Bezeichnungen: kb = Kopfbrust; ab = Abdomen; s = Schwanzflosse; 1–20 = die Körpersegmente; a1, a2 = Antennen; f1–f5 = Gehfusspaare; r = Stirnfortsatz (Rostrum); sch = Schuppe der zweiten Antenne; nf = Nackenfurche; x = Herz-, y = Lebergegend; e = Seitenausschnitte des Kopfbrustschildes; t = letztes Glied (Telson); fa6, ah = Schwimmfüsse des 19. Segmentes; s’ = Scheere des ersten Fusspaares.
2. Brachyura (Krabben).
Das im fossilen Zustande oft allein erhaltene Cephalothoraxschild besitzt meist eine kurze, gedrungene, häufig vierseitige Gestalt. Erstes Fusspaar gross, mit kräftigen Scheeren. Meist werden durch Furchen zahlreiche Leibesregionen auf dem Kopfbrustschilde abgeschieden (Fig. 602). Vom Jura an mit Sicherheit bekannt. Die hauptsächlichste Entwickelung fällt in die Tertiärzeit und die Gegenwart. Manche der känozoischen Formen leben im Süsswasser.
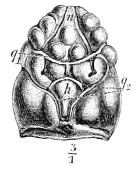
Fig. 602. Prosopon tuberosum v. Mey. Valengien. Boucheran, Dép. du Jura. Isolirter Cephalothorax von der Oberseite. w = Magengegend; q1 = vordere, q2 = hintere Nackenfurche; h = Herzregion.
Prosopon v. Mey. (Fig. 602). Kleiner, drei- oder fünfseitiger Cephalothorax, meist mit Warzen und Körnern verziert. Vor der vorderen Nackenfurche (q1) liegt die durch 2 convergirende Furchen seitlich begrenzte Magengegend (w); die hintere Querfurche (q2) schliesst mit einer kurzen, bogenförmigen Furche die Herzregion (h) ein. Hinterleib und Anhänge nicht mit Sicherheit bekannt. Dogger — Neocom, häufig im Oberen Malm Mitteleuropas (»Prosoponkalke«).
P. marginatum v. Mey.}Oberer Malm. Schwaben.
P. aculeatum v. Mey.
P. tuberosum v. Mey. Untere Kreide (Valengien). Französischer Jura.
Fig. 603. Harpactocarcinus punctulatus Desm. sp. Eocän. Vicentin. A Männchen von der Oberseite. B dasselbe von der Unterseite. r = Rostrum; a = Augenhöhle; 8–20 = Segmente; mx = Maxille; f1 = erstes Fusspaar mit starken Scheeren (s, s’); f2–f3 = die folgenden 4 Fusspaare; a3–a7 = Hinterleibsglieder; st1–st4 = Sternite.
Harpactocarcinus M.-Edw. (Fig. 603). Die vorderen Seitenränder des breiten, sechsseitigen Cephalothorax sind gezackt, ebenso der breite Stirnfortsatz (Rostrum — r), neben welchem die tiefen Augenhöhlen (a) liegen. Bauchseite durch eine Reihe unpaarer Platten (Sternite — st1–st4) bedeckt, welche den Fusspaaren entsprechen. Darüber ist das Ende des beim Männchen (B) schmalen, beim Weibchen viel breiteren Hinterleibes (a3–a7) geschlagen; die Segmente desselben z. Th. verwachsen (a5–a3). Erstes Fusspaar (f1) mit starken Scheeren (s’, s). Häufig im Eocän der Schweiz und Südeuropas.
H. punctulatus Desm. sp. (Fig. 603). Eocän. Schweiz, Vicentin etc.
C. Entomostraca.
Abgesehen von den Copepoden, welche keine feste Hülle besitzen, wird der Leib der Entomostraca von einer 2- oder vielklappigen, seltener einfachen Schale umhüllt. Bei den freibeweglichen Formen (Ostracoda) ist die Schale zweiklappig, wie bei manchen Phyllopoden (Estheria — p. 501), bei den festsitzenden (Cirripedia) besteht sie aus zahlreichen, durch einen Mantel vereinigten Stücken, die nur ausnahmsweise zu einem einzigen verwachsen.
7. Unterordnung Ostracoda (Muschelkrebse).
Litteratur über Ostracoda.
Barrande, J. Système silurien du centre de la Bohème. Vol. I. Supplém. 1872.
Brady, G. St. Monograph of the Ostracoda of the Antwerp Crag. Trans. Zool. Soc. Vol. X. 1878.
Jones, Rup. A Monograph of the Entomostraca of the Cretaceous Formation of England. Palaeont. Soc. 1849.
—— A Monograph of the tertiary Entomostraca of England. Palaeontogr. Society. 1856.
Jones, Kirkby and G. Brady. A Monograph of the British fossil bivalved Entomostraca from the Carboniferous formations. Palaeontographical Society 1874 u. 1884.
Meist kleine, seitlich zusammengedrückte, ungegliederte Thiere mit 7 Gliedmaassenpaaren und kurzem Hinterleibe. Eine zweiklappige, muschelartige, hornige oder kalkige Schale umschliesst das Thier; das Oeffnen derselben geschieht durch eine elastische Membran, das Schliessen durch ein Muskelpaar, dessen Ansatzstelle auf der Oberfläche der Schale durch einen Höcker oder durch Grübchen angedeutet ist (Fig. 604 m). Ebenso bezeichnet oft eine Erhöhung der Schale die Lage der Augen (Fig. 604 a). Cambrium — Gegenwart.
Fam. Leperditidae.
Schale ungleichklappig oder gleichklappig, relativ gross und dick. Vorder- und Hinterrand weder klaffend noch ausgeschnitten. Fast ausschliesslich in paläozoischen, seltener in mesozoischen Formationen.
Leperditia Roua. (Fig. 604). Die Oberfläche der grossen, ungleichklappigen Schale (A) ist glatt bis auf den vorn gelegenen Augenhöcker (a) und die netzförmige Ansatzstelle des Muskels (m). Bis ca. 20 mm gross. Cambrium — Subcarbon, am häufigsten im Silur (Europa, Nordamerika).
L. Hisingeri Schm. (Fig. 604). Obersilur. Gotland, Esthland.
Beyrichia M’Coy. (Fig. 605). Schale wahrscheinlich gleichklappig (C). Oberfläche mit einer wechselnden Anzahl von Wülsten verziert, die sich in vordere (Kopfwulst — k), mittlere (Mittelwulst — m) und hintere (Schwanzwulst — s) vertheilen. Der untere Schwanzwulst beim Weibchen stärker angeschwollen (B s) als beim Männchen. Cambrium — Devon in Europa und Nordamerika, sehr häufig im obersten Silur (»Beyrichienkalk«) Nordeuropas (als Geschiebe im norddeutschen Flachlande).
B. tuberculata Kloed. sp. (Fig. 605). Oberstes Silur (Beyrichienkalk). Nordeuropa; nebst zahlreichen anderen Arten in Geschieben der norddeutschen Tiefebene.
Fig. 604. Leperditia Hisingeri Schm. Obersilur. Gotland. A Schale gegen die linke Klappe gesehen. B dieselbe von unten, C von oben. s = linke, s’ = rechte Klappe; a = Augenhöcker; m = Muskelansatz.
Fig. 605. A, B, D Beyrichia tuberculata Kloed. sp. Obersilurisches Geschiebe (Beyrichienkalk). Norddeutschland. A linke Klappe des Männchens, B rechte Klappe des Weibchens. C B. Bronni Reut. Zweiklappige Schale gegen die Bauchseite gesehen. k = Kopfwülste; m = Mittelwülste; s = Schwanzwülste. l = Vereinigungslinie der beiden Klappen auf der Bauchseite.
Fam. Cypridinidae.
Vorderrand der Schale mit Ausschnitt (Fig. 606 e, f) zum Hervorstrecken der Antennen. Cambrium — Gegenwart, hauptsächlich im Devon und in der Steinkohlenformation.
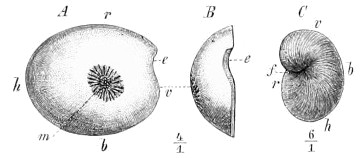
Fig. 606. A, B Cypridina Phillipsi Jon. Subcarbon. Irland. A rechte Klappe von der Seite, B von vorn gesehen. C Entomis serratostriata Sdb. Oberdevon (Cypridinenschiefer). Nassau. Rechte Klappe von der Seite. v = Vorder-, h = Hinter-, b = Bauch-, r = Rückenrand der Schale; m = Ansatzstelle des Muskels; e = Antennenausschnitt; f = Querfurche.
Fig. 607. Cypridina mediterranea Cost. Q. Lebend. Mittelmeer. Das Thier in der Schale, von der Seite gesehen. a1 = erster, a2 = zweiter Fühler; pm = Unterkiefer; pf = Putzfuss.
Cypridina M.-Edw. (Fig. 606 A, B; 607). Schale glatt, zuweilen die Muskelansatzstelle zeigend (A m). Antennenausschnitt kurz und tief (e). Steinkohlenformation, Kreide und Lebend in den wärmeren Meeren.
C. Phillipsi Jon. (Fig. 606 A, B). Subcarbon. Grossbritannien.
C. mediterranea Cost. (Fig. 607). Lebend. Mittelmeer.
Von den verwandten, zumeist paläozoischen Gattungen heben wir hervor:
Entomis Jon. (Fig. 606 C). Schale jederseits mit einer tiefen, gebogenen Querfurche (f), welche am Rückenrande beginnt. Oberfläche gestreift (C) oder glatt. Cambrium — Subcarbon, sehr häufig im sog. »Cypridinenschiefer« des Oberdevons in Mitteleuropa und am Ural.
E. serratostriata Sdb. (Fig. 606 C).
Zahlreiche Vertreter der übrigen Familien, wie namentlich der Cytherellidae, Cytheridae und Cypridae sind z. Th. aus paläozoischen, namentlich aber aus mesozoischen und känozoischen Formationen bekannt. Die kleinen Schälchen liegen in marinen, brackischen oder Süsswasserablagerungen oft in Massen zusammengehäuft, wie z. B. Bairdia in gewissen Schichten der Trias, Cypris in Süsswasserbildungen des Miocäns.