SYSTEMATIK. (continued 10)
Reading edition
Die Unterscheidung der verzierten, älteren Ostracoden-Schalen von den zweiklappigen Schalen der gleichaltrigen Phyllocarida (p. 500) hält oft schwer oder ist unmöglich, wenn keine weiteren Theile des Thieres erhalten sind. Wir können uns die Muschelkrebse durch Einbeziehung des Hinterleibes in die Schale unter theilweisem Verluste der Segmentirung hervorgegangen denken.
8. Unterordnung Cirripedia (Rankenfüssler).
Litteratur über Cirripedia.
Darwin, Ch. A Monograph of the fossil Lepadidae of Great Britain. Palaeont. Soc. 1851.
—— A Monograph of the fossil Balanidae and Verrucidae of Great Britain. Palaeont. Society 1854.
Nur bei der Gruppe der Thoracica ist die Kopfhülle kalkig, mithin fossil erhaltbar. Sie besteht meist aus zahlreichen, getrennten oder mit einander verwachsenen Kalkplatten. Am Hinterleibe 6 Paar Rankenfüsse (Fig. 608 c’).
A. Pedunculata. Körper gestielt. Stiel nackt oder beschuppt. Silur — Gegenwart.
Als Beispiel für diese Gruppe möge erwähnt werden
Loricula Sow. (Fig. 608). Stiel jederseits von 3 Längsreihen (I, II, III) Seitenplatten, auf dem Rücken (Carinalseite — ck) und Bauche (Rostralseite — rk) mit je einer Doppelreihe kleiner Platten bedeckt. Der vordere Theil der Schale (Capitulum — s, l’, l, c, t) aus 9 Platten bestehend, von denen die unpaare, rückenständige als Carina (c), die seitlichen, paarigen als Terga (t), Lateralia (l’, l) und Scuta (s) bezeichnet werden. Ein unpaares Stück auf der Bauchseite (Rostrum) scheint zu fehlen. Obere Kreide, Europa, Libanon.
L. pulchella Sow. (Fig. 608). Turon. England, Böhmen. Mit der einen Seite auf Ammonitenschalen aufgewachsen, daher die aufgewachsene Hälfte fast ganz unbeschalt.
Verwandte Gattungen schon seit der Silurzeit bekannt. Einige lebende Formen (Lepas antifera L.) in allen Meeren.
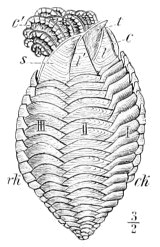
Fig. 608. Loricula pulchella Sow. Turon. Kent, England. Schale von der Seite gesehen, restaurirt. Die Rankenfüsse (c’) nach Analogie der lebenden Formen eingezeichnet. I, II, III — Seitenplatten, ck = Carinalplatten, rk = Rostralplatten des Stieles; c = Carina; t = Tergum; l, l’ = Lateralia; s = Scutum.
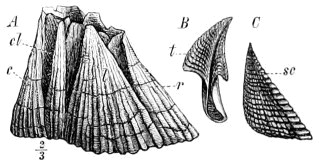
Fig. 609. Balanus concavus Br. Pliocän (Crag). England. A Schale von der Seite gesehen. c = Carina; cl = Carino-Laterale; l = Laterale; r = Rostrum. B isolirtes Tergum (t). C isolirtes Scutum (sc).
B. Operculata, Körper ungestielt, mit breiter Basis aufgewachsen (Fig. 609 A). Schalenstücke zu einem Ringe vereinigt; nur Scutum (C) und Tergum (B) bilden einen beweglichen Deckel. Devon — Gegenwart, häufig im Tertiär.
Balanus List. (Fig. 609). Die Schale besteht aus der unpaaren Carina (c), dem Rostrum (r) und den paarigen Carino-Lateralia (cl) und Lateralia (l); Scutum (sc) und Tergum (t) frei und beweglich mit einander verbunden bilden den Deckel. Basis der Schale häufig oder kalkig. Zahlreiche Arten im Tertiär und in der Gegenwart.
B. concavus Br. (Fig. 609). Neogen. Europa, Nord- und Südamerika. Lebend an den Küsten des pacifischen Oceans.
Die Cirripedia sind eine durch festsitzende Lebensweise stark modificirte Abtheilung der Crustaceen, welche erst in den jüngeren Formationen sich reichlich entwickelt. Da die Pedunculata noch eine deutliche Segmentirung des Panzers erkennen lassen, so dürften sie an panzertragende Formen des Paläozoicums (Trilobiten?) anschliessen.
Rückblick auf die Crustacea.
Da im Cambrium bereits alle 3 Ordnungen der Crustaceen in mehr oder weniger typischen Vertretern vorkommen, so ist eine Zurückführung derselben auf eine gemeinsame Ausgangsgruppe nach paläontologischen Daten vor der Hand nicht möglich. Wir können aber die ältesten Formen in 2 Gruppen sondern, von denen die eine durch die Trilobiten mit reichlich segmentirtem Panzer, die andere durch die Phyllocariden und Ostracoden mit verschmolzenen Panzersegmenten repräsentirt wird. An die Trilobiten schliessen sich die Xiphosuren und jedenfalls auch die Isopoden enge an. Beide bewahren eine auffallende habituelle Aehnlichkeit mit den Trilobiten, zudem tritt eine Verschmelzung der Mittelleibssegmente mit dem Kopfe nur in ganz beschränkter Weise ein und die Augen und die Anhänge behalten z. gr. Th. die für die Trilobiten bezeichnende Form und Lage. Bei den Xiphosuren erhält sich der breite Stirnumschlag der Schale und es kommt nur zur Bildung eines einzigen, kleinen Antennenpaares, während die Isopoden und ebenso die Amphipoden 2 wohlentwickelte Fühlerpaare bekommen, dabei aber die Beweglichkeit der Rumpfsegmente erhalten bleibt. Als durch festsitzende Lebensweise stark modificirter Seitenzweig des Trilobitenstammes dürften die Cirripedien aufzufassen sein, deren älteste Vertreter (Pedunculata) sich durch einen reichlich segmentirten Panzer auszeichnen. Im Gegensatz zu diesen Gliedern des Trilobitenstammes tritt im Phyllocaridenstamm schon frühzeitig eine Verschmelzung der Rumpfsegmente mit dem Kopfe im Panzer und grösstentheils im Weichkörper ein und diese giebt sich in dem Auftreten eines Kopfbrustschildes zu erkennen. Bei den Phyllopoden, Leptostraca und Thoracostraca bleibt der Hinterleib segmentirt und beweglich, und die Augen rücken in den beiden letztgenannten Gruppen nach vorn und kommen auf bewegliche Stiele zu stehen. Die Larve der Thoracostraca zeigt uns das Bild eines Phyllocariden (Zooea-Stadium — Fig. 569). Bei den Ostracoden geht mit der Einbeziehung des Hinterleibes in die zweiklappige, phyllocaridenartige Schale ein Verlust der Segmentation Hand in Hand. Die Copepoda sind fossil unbekannt.
Im Cambrium giebt es eine Trilobitenform, welcher man wegen ihres ausserordentlich grossen, in der Mitte der Länge nach getheilten Kopfschildes (Hydrocephalus) eine Mittelstellung zwischen Trilobiten und Phyllocariden einzuräumen geneigt sein könnte; im Uebrigen fehlen aber Zwischenglieder der beiden Stämme bisher noch vollständig.
Der merkwürdigen Uebereinstimmung, welche sich in der Zahl der Kopfanhänge und der Gliederung des Körpers zwischen den Xiphosura und Gigantostraca zu erkennen giebt, wurde schon oben gedacht. Kaum geringer dürfte die Aehnlichkeit zwischen den Gigantostraca und gewissen Arachnoideen, insbesondere mit den Arthrogastra (mit gegliedertem Hinterleibe) anzuschlagen sein.
2. Klasse: Arachnoidea.
Litteratur über Arachnoidea.
Zittel. Handbuch der Paläontologie. Bd. II, p. 721.
Schon aus dem Obersilur kennt man Reste von Scorpionen und in der Steinkohlenformation findet sich die Gruppe der Anthracomarti mit z. Th. reducirten Abdominalsegmenten weit verbreitet. Aus dieser Zeit kennt man auch die ältesten echten Spinnen (Araneae). Die meisten paläozoischen Arthrogastra sind Wasserbewohner, die ältesten jedenfalls Bewohner des Meeres gewesen, während die jüngeren z. Th., die heutigen ausnahmslos an den Aufenthalt in der Luft angepasst sind.
3. Klasse: Myriapoda (Tausendfüssler).
Litteratur über Myriapoda.
Zittel. Handbuch der Paläontologie. Bd. II, p. 721.
Am wurmartigen Körper scheidet sich nur der Kopf als besondere Leibesregion ab; nur selten verwachsen einige Körpersegmente mit demselben. Scheinbar kommen bei manchen lebenden und fossilen Formen 2 Anhangspaare auf 1 Segment.
Fossile Vertreter finden sich schon im Devon (Old red sandstone), mit einiger Häufigkeit in der Steinkohlenformation. Die ersteren sind wahrscheinlich Meeres-, die letzteren Süsswasserbewohner gewesen. Aus mesozoischen Schichten sind die Tausendfüssler nicht mit Sicherheit bekannt. Dagegen erweisen sich die Oligocänschichten Europas (Bernstein des Samlandes, Süsswassergyps von Aix-en-Provence, Braunkohle von Rott a. Niederrhein) und Nordamerikas (Green River-Schichten) als reich an Myriapodenresten, die sich in die heutigen Ordnungen der Chilopoda und Diplopoda einreihen lassen, während für die paläozoischen Formen die Ordnungen der
Protosyngnatha (wenige Segmente, raupenähnlich, Oberfläche mit Nadelbüscheln — Steinkohlenformation) und
Archipolypoda (zahlreiche Segmente, z. Th. abwechselnd verschieden gestaltet — Devon und Steinkohlenformation)
aufgestellt wurden.
4. Klasse: Hexapoda (= Insecta).
Litteratur über Hexapoda.
Scudder, S. H., in Zittel’s Handbuch der Paläontologie Bd. II, p. 747–749, 751–753.
Fossile Insekten sind in grosser Menge bekannt (ca. 2600 Arten), aber ihr Vorkommen beschränkt sich auf Ablagerungen im Süsswasser oder bestimmte marine Absätze, in welche sie durch die herrschenden Winde hineingetragen wurden. Die hauptsächlichsten Fundpunkte (zumeist gleichzeitig auch solche für Myriapoden und Spinnen) sind:
Miocän: Oeningen (Baden), Rott a. Niederrhein, Radoboj (Kroatien), Parschlug (Steiermark).
Oligocän: Bernstein des Samlandes, Brunstatt b. Mülhausen (Ober-Elsass), Aix (Provence), Florissant (Colorado), Green River (Nordamerika).
Eocän: Insel Wight, Phosphorite von Quercy.
Oberer Malm: Südengland (Purbeck), Solnhofen (Franken).
Lias: Schambelen (Ct. Aargau), England, Mecklenburg.
Trias: Südpark (Colorado).
Perm: Lebach b. Saarbrücken, Weissig (Sachsen).
Carbon: Commentry und Allier (Frankreich), Mason Crag (Illinois), Saarbrücken, Wettin b. Halle, Manebach (Thüringen), Belgien, England.
Devon: Nordamerika.
Alle Abtheilungen der heutigen Hexapoden sind aus mesozoischen und känozoischen Ablagerungen bekannt; die meisten jungfossilen lassen sich ohne grosse Schwierigkeiten in die Ordnungen und Unterordnungen der
A. Heterometabola:
1) Orthoptera (Schaben, Heuschrecken, Eintagsfliegen, Libellen), 2) Neuroptera (Köcherfliegen), 3) Hemiptera (Wanzen), 4) Coleoptera (Käfer);
B. Metabola:
5) Diptera (Fliegen), 6) Lepidoptera (Schmetterlinge), 7) Hymenoptera (Bienen, Ameisen)
einreihen. Anders die paläozoischen und ein Theil der triadischen Formen. Sie werden als
Palaeodictyoptera
zusammengefasst. Nach Scudder lassen sich dieselben in drei Gruppen zertheilen, welche die Charaktere der Orthoptera, Neuroptera und Hemiptera mehr oder minder ausgeprägt zur Schau tragen. Aber die beiden Flügelpaare waren fast vollständig gleichmässig entwickelt und die dünne Flügelhaut besass eine einfache Nervatur. Es waren zumeist grosse und kräftige Thiere. Erst im Mesozoicum soll die Differenzirung der Flügelpaare sich ausgebildet haben. In diese Zeit fällt die Hauptentwickelung der Heterometabola mit Ausnahme der Käfer, welch’ letztere erst mit den Metabola in den känozoischen Schichten und in der Gegenwart den Höhepunkt erreichen.
IX. Kreis: Tunicata (Mantelthiere).
Der Körper der Tunicata enthält keine Hartgebilde; es sind daher auch keine fossilen Reste aus dieser Thiergruppe bekannt.
Anhang zu den Evertebraten.
Eine Anzahl erst unvollständig gekannter oder nicht bestimmt gedeuteter Fossilien, wie das präcambrische Eozoon, die Archaeocyathinae, Receptaculitidae u. a., wurden in der vorhergehenden Darstellung der wirbellosen Thiere übergangen. Zum Schlusse möge noch einer Gruppe von Körpern gedacht werden, die den Namen Fossilien in bedingter Weise Verdienen, der
Organolithe.
Als solche bezeichnet man mikroskopisch kleine, zumeist scheibenförmige, oft manschettenknopfartige oder stabförmige Kalkkörperchen (Fig. 610), die in grossen Mengen in den heutigen Meeresabsätzen gefunden werden, mit gleicher Häufigkeit aber in allen Kalksteinen und Mergeln aus früheren Erdperioden anzutreffen sind, soweit dieselben keine tiefgreifende Umkrystallisation erfahren haben. So besteht namentlich die weisse Schreibkreide zum überwiegenden Theile aus Coccolithen und Discolithen (A–C) oder ähnlichen, weniger regelmässig umgrenzten Kalkkörperchen. Dieselben werden häufig nicht aus einem einzigen Kalkspathkrystall, vielmehr aus sehr zahlreichen, aber äusserst kleinen, entweder ungefähr parallel orientirten oder nach Art der Sphärokrystalle radial um einen Punkt angeordneten Kryställchen gebildet; das letztere ist bei den Coccolithen der Fall, welche dementsprechend eine feine radiale Streifung (Fig. 610 B) und zwischen gekreuzten Nicols ein schwarzes Interferenzkreuz erkennen lassen. Alle Versuche, diese Körper als das Product eines bestimmten, sehr niedrig organisirten marinen Lebewesens (Bathybius) hinzustellen, sind gescheitert, obgleich es kaum zweifelhaft sein kann, dass bei ihrer Bildung organische Thätigkeit wirksam war und ist. Denn wir kennen keinen Vorgang, durch welchen der im Meerwasser kaum spurenweise gelöste kohlensaure Kalk in bedeutenderen Mengen zum Absatz gebracht werden könnte, da der in das Meer in gelöster oder aufgeschwemmter Form eingeführte kohlensaure Kalk sofort in das schwefelsaure (bez. Haloid-) Salz übergeführt wird. Ein einfacher Versuch lehrt, dass Eiweisssubstanz, in Gyps- oder Chlorcalciumhaltigem Wasser der Zersetzung überlassen, kohlensauren Kalk in der Form einfacher, scheibenförmiger, kugeliger oder stabförmiger Coccolithen ausscheidet. Die Ausscheidung erfolgt durch das bei der Zersetzung entstehende kohlensaure Ammoniak. Das Restproduct der Eiweisssubstanz (eine stickstoffärmere, dem Chitin, Conchyliolin, Spongin etc. ähnliche, sehr widerstandsfähige Masse) umgiebt die ausgeschiedenen Kalkspathkryställchen als feine Häutchen und macht sie dadurch weniger leicht angreifbar. Sein Vorhandensein verhindert die Bildung einfacher Krystalle und verursacht die Sphärostructur. Nach diesem Versuche zu schliessen findet eine Ausscheidung von kohlensaurem Kalk überall dort im Meerwasser statt, wo Eiweiss- oder überhaupt Stickstoffhaltige Substanzen der Verwesung anheimfallen. Das geschieht aber nicht nur an abgestorbenen Organismen, sondern auch an der Körperoberfläche sehr vieler, wenn nicht aller Wasserthiere. Auch solche Theile lebender Wasserthiere, welche keine Kalkschale besitzen, wie z. B. der Fuss und Sipho der Zweischaler, die ganze Oberfläche nackter Mollusken etc. etc., sind in der Regel mit einem Ueberzuge von Conchyolin oder Chitin bedeckt und letzterer enthält ausnahmslos kleine Kalkkörper zumeist von unregelmässiger Begrenzung. Diese werden mit dem Chitinüberzuge abgeworfen und tragen zur Bildung des Kalkschlammes auf dem Meeresboden bei. Es erscheint dieser Vorgang der Kalkausscheidung wesentlich identisch mit demjenigen, welcher zur Bildung fester Kalkschalen führt, wobei das lösliche Kalksalz z. Th. vom umgebenden Medium oder (wie bei den Landschnecken) ausschliesslich durch den Lebensprozess zugeführt wird.
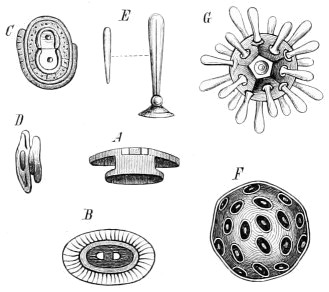
Fig. 610. Organolithe des Tiefseeschlammes. A Coccolith im Querschnitt, B derselbe in der Flächenansicht, C Discolith, D Cyatholith, E Rhabdolithe, F Coccosphären (um eine Kugel angeordnete Coccolithe), G Rhabdosphären (um eine Kugel angeordnete Rhabdolithe). Alle in sehr starker Vergrösserung.
Hiernach scheint es berechtigt zu sein, alle in heutigen Meeren entstandenen Absätze von kohlensaurem Kalk als durch organische Thätigkeit bedingt anzusehen und diese Auffassung auch auf alle die überwiegende Menge der kalkigen Sedimente aus früheren Zeiten unter der Voraussetzung auszudehnen, dass die chemischen Vorgänge in den Meeren der Vorzeit ähnliche waren, wie heut zu Tage. In diesem Sinne sind alle marinen Kalksteine als Fossilien (zumeist durch Evertebrata erzeugt) anzusprechen.
Unter welchen Bedingungen die zierlichen, stabförmigen Gebilde, welche man als Rhabdolithen bezeichnet, gebildet werden, bleibt noch zweifelhaft; sie finden (Fig. 610 E, G) sich mit den Coccolithen zusammen im Tiefseeschlamm.
In bedingter Weise dürfte eine gleiche, d. h. wesentlich durch organische Thätigkeit bedingte Entstehung auch für andere im Meere abgesetzte Substanzen, wie die amorphe Kieselerde, das Eisenoxydhydrat etc. geltend zu machen sein.
X. Kreis: Vertebrata (Wirbelthiere).
Von Dr. L. Döderlein.
Wirbelthiere sind bilateral symmetrische, innerlich segmentirte Thiere mit knorpeligem oder knöchernem Innenskelet und höchstens zwei Paar Gliedmassen. Das gegliederte Achsenskelet (Wirbelsäule) entwickelt sich um die Chorda dorsalis; dorsal von derselben liegt das Nervencentrum, ventral die Eingeweidehöhle.
Die durch reichlichere Verkalkung fossil erhaltungsfähigen Theile des Wirbelthierkörpers gehören entweder dem Innenskelet an, oder es sind Hautverknöcherungen. Am Innenskelet sind zu unterscheiden die Wirbelsäule mit ihren Anhängen, der Schädel mit dem Visceralskelet und das Skelet der paarigen und unpaaren Gliedmassen. Meist ist das Innenskelet knorpelig angelegt. Dieser Knorpel kann aber Kalksalze aufnehmen (Kalkknorpel der Chondropterygii), oder er kann theilweise oder ganz durch Knochen ersetzt werden, der die charakteristischen sternförmigen Knochenkörperchen enthält (Knorpelknochen der Euichthyes und Quadrupeda).
Hautverknöcherungen (in der äusseren Haut und in den Wandungen der Mundhöhle) finden sich in ihrer ursprünglichsten Gestalt als kleine Hautzähnchen ausgebildet (Placoidschuppen der Selachii), auf die sich die mannigfaltigen übrigen Hautgebilde, wie Stacheln, Zähne, Schuppen, Knochenschilder und -platten (Hautknochen) zurückführen lassen; letztere können zu Theilen des Innenskelets (Schädel und Schultergürtel) in so innige Beziehungen treten, dass sie zuletzt wesentliche Bestandtheile desselben bilden (Deck- oder Belegknochen oder secundäre Knochen); Hautgebilde anderer Art sind die Flossenstrahlen sowie vielleicht die Knochenplatten, welche den Panzer der Edentaten u. s. w. zusammensetzen.
1. Die Wirbelsäule und ihre Anhänge.
Als Grundlage der Wirbelsäule erscheint stets zuerst (Fig. 611) die Chorda dorsalis (ch — Wirbelsaite), ein ungegliederter, gallertartiger, elastischer Längsstrang, umgeben von der ebenfalls ungegliederten häutigen Chordascheide (c). In jedem Körpersegmente können sich, median von der Rumpfmusculatur, unmittelbar über der Chordascheide ein Paar dorsale, das Rückenmark (N) umfassende, oft auch ein Paar ähnliche ventrale Knorpelspangen erheben, die oberen (ob) und die unteren (ub) Wirbelbögen (Neuralbögen und Hämalbögen). Nur bei den niedersten Fischen erhält sich dieser Zustand der Wirbelsäule während des ganzen Lebens.
Gewöhnlich gliedert sich die nunmehr knorpelig werdende Chordascheide in ebenso viele ringförmige Abschnitte, als sie obere Wirbelbogenpaare trägt. Jeder solche Abschnitt mit dem dazu gehörigen Stück der Chorda bildet ein Wirbelcentrum (c + ch, primitiver Wirbelkörper). Das Wirbelcentrum in Verbindung mit den plattenartigen Basen der dazu gehörigen Wirbelbögen, von denen es meist umwachsen wird, stellt den (secundären) Wirbelkörper (k) dar. Wirbel wird der Wirbelkörper mit seinen unbeweglichen Anhängen genannt.
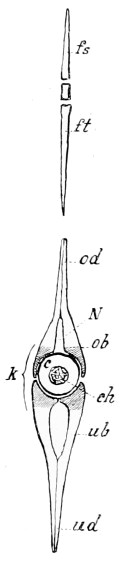
Fig. 611. Schwanzwirbel eines Fisches im Querschnitt, schematisch. N = Rückenmarkscanal; c = Chordascheide; ch = Chorda dorsalis; ob = oberer Wirbelbogen; od = oberer Dornfortsatz; ub = unterer Wirbelbogen; ud = unterer Dornfortsatz. Schraffirt sind die Theile der Wirbelbögen, die an der Bildung des Wirbelkörpers (k) theilnehmen. ft = Flossenträger; fs = Flossenstrahl.
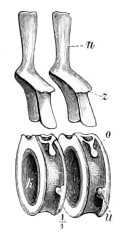
Fig. 612. Amphicöle Wirbel von Ichthyosaurus mit getrennten oberen Bögen. n = oberer Dornfortsatz; o = obere, u = untere Gelenkfläche für die beiden Rippenköpfe; z = Gelenkfortsatz; k = Wirbelkörper.
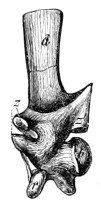
Fig. 613. Procöler Wirbel von Palaeophis typhaeus Ow. Londonthon von England. d = oberer Dornfortsatz; h = hinterer Gelenkkopf des Wirbelkörpers; r = Querfortsatz mit Gelenk für die einköpfige Rippe; z = vorderer, z’ = hinterer Gelenkfortsatz.
Bei höheren Formen tritt bald Verknöcherung (bez. Verkalkung: Chondropterygii) an den Wirbeln auf, die geringeren oder grösseren Umfang erreichen kann; stets finden sich zuerst die Wirbelbögen und ihre Anhänge verknöchert; nach dem Verhalten des Wirbelcentrums lassen sich verschiedene Stufen der Wirbelbildung annehmen:
Wirbelcentrum nicht verknöchert (Chordascheide noch ungegliedert): Nacktwirbel (Fig. 618, 645).
Wirbelcentrum durch ein Paar getrennter oder dorsal verwachsener Knochenstücke (Pleurocentra) dargestellt: rhachitome Wirbel (Fig. 614) und Halbwirbel (Fig. 710).
Wirbelcentrum durch einen von der (persistirenden) Chorda noch durchbohrten Knochenring dargestellt: Ring- oder Hohlwirbel.
Wirbelcentrum vollständig (bis zur Mitte) verknöchert, durch Ligamente oder Nähte von den oberen Bögen getrennt (Fig. 612 u. 615).
Wirbelcentrum vollständig verknöchert, mit den oberen Bögen vollkommen verschmolzen (synostosirt oder ankylosirt Fig. 613).
Meist sind die einzelnen Wirbelkörper gegen einander beweglich, entweder nur durch elastisches Gewebe oder auch durch Gelenke mit einander verbunden; öfter verwachsen mehrere Wirbelkörper mit einander zu einer unbeweglichen Masse. Die Chorda kann durch Knorpel- oder Knochenmassen, die von der Chordascheide aus entstehen, eingeschnürt oder schliesslich ganz zum Schwunde gebracht werden, entweder nur vertebral (in der Mitte der Wirbel) oder auch intervertebral (zwischen den Wirbeln). Man unterscheidet danach verschiedene Arten von Wirbeln:
Wird die Chorda nur vertebral eingeschnürt oder ganz verdrängt, während sie intervertebral noch wohl erhalten bleibt, so entstehen die sanduhrförmigen biconcaven oder amphicölen Wirbelkörper (Fig. 612).
Wird die Chorda auch intervertebral verdrängt durch Knorpel- oder Knochenmassen, welche förmliche Gelenke herstellen, so entstehen die opisthocölen Wirbelkörper mit vorderem Gelenkkopfe und hinterer Gelenkgrube (Gelenkpfanne), oder umgekehrt die procölen mit hinterem Gelenkkopfe (Fig. 613 h) und vorderer Gelenkgrube.
Die Chorda kann intervertebral verdrängt werden durch elastische Zwischenwirbelscheiben, welche die meist biplanen (vorn und hinten ebenen) Wirbelkörper mit einander verbinden (Mammalia).
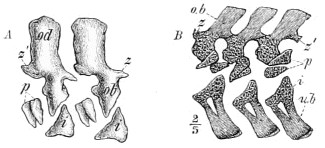
Fig. 614. Rhachitome Wirbel von Archegosaurus. A Rumpfwirbel. B Schwanzwirbel. i = Intercentrum; p = Pleurocentra; ob, od = oberer Bogen mit Dornfortsatz; ub = unterer Dornfortsatz; z = vorderer, z’ = hinterer Gelenkfortsatz. Der von den Y-förmigen unteren Dornfortsätzen eingeschlossene mediane Canal für die Blutgefässe ist sichtbar.
Die beiden Hälften eines oberen oder eines unteren Bogenpaares verwachsen häufig am distalen Ende (mit oder ohne Hinzutreten eines besonderen Knochenstückes) und bilden die oft sehr verlängerten oberen und unteren Dornfortsätze (Fig. 611, 618 u. 619 od u. ud — Processus spinosus). Die unteren sind fast immer auf die Schwanzwirbel beschränkt. an denen sie oft Y-förmige ventrale Anhänge bilden (Fig. 617 ud u. 619 ub, Sparrknochen oder chevron bones). Intercentrum (Fig. 614, 615 i) oder Hypocentrum wird die oft selbständig verknöchernde Basis der unteren Bögen genannt; dasselbe kann sehr verschieden entwickelt sein:
Intercentrum wohl entwickelt, durch paarige Platten oder unpaare Halbringe (oft keilförmig, wenn von der Seite gesehen) dargestellt, die etwa die untere Hälfte der Wirbelkörper (Halbwirbel) bilden (Fig. 614, 620 u. 710 i), frei oder mit dem übrigen Wirbelkörper verwachsen (Pisces und einige Stegocephali).
Intercentrum wohl entwickelt, durch Knochenringe dargestellt, die je zwei Wirbelcentra vollständig von einander trennen, so dass der Wirbelkörper in zwei hinter einander liegende Hälften getrennt erscheint (embolomere Wirbel: Fig. 616 i, 711 B; einige Pisces und Stegocephali).
Intercentrum rudimentär, durch winzige Knochenstückchen dargestellt, die ventral an der Grenze je zweier Wirbelkörper liegen (Fig. 615 i; einzelne Quadrupeda).
Intercentrum gar nicht verknöchert (die übrigen Quadrupeda).
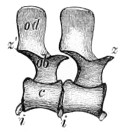
Fig. 615. Zwei präsacrale amphicöle Wirbel von Palaeohatteria. i = Intercentrum; c = Wirbelcentrum; ob = obere Bögen mit Dornfortsatz (od); z, z’ = Gelenkfortsätze.
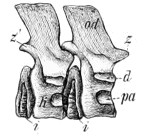
Fig. 616. Embolomere Wirbel aus der Brustregion von Cricotus. i = Intercentrum; k = Wirbelkörper; d = Gelenk für den oberen, p = für den unteren Rippenkopf; od = oberer Dornfortsatz; z, z’ = Gelenkfortsätze.
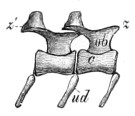
Fig. 617. Zwei Schwanzwirbel von Palaeohatteria. ud = untere Dornfortsätze.
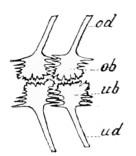
Fig. 618. Zwei Schwanzwirbel von Pycnodus platessus (Nacktwirbel). ob = oberer, ub = unterer Bogen; od = oberer, ud = unterer Dornfortsatz.
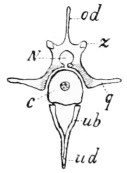
Fig. 619. Schema eines Schwanzwirbels von Reptilien mit Y-förmigen unteren Bögen (ub). c = Wirbelcentrum; od = oberer, ud = unterer Dornfortsatz; q = Querfortsatz: z = Gelenkfortsatz; N = Rückenmarkscanal.
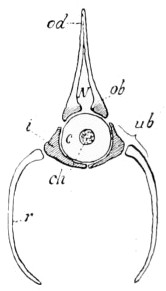
Fig. 620. Rumpfwirbel eines Fisches, schematisch. c = Chordascheide; ch = Chorda; ob = obere Bögen mit Dornfortsatz (od); ub = untere Bögen; i = deren basaler Theil (Intercentrum); r = Rippe (Pleuralbogen); N = Rückenmarkscanal. Schraffirt sind die Theile der Wirbelbögen, welche an der Bildung des Wirbelkörpers theilnehmen.
In der Rumpfregion der meisten Fische (Fig. 620) gliedern sich die Enden der unteren Bögen von der Basis (i) ab und bilden Rippen (r) (Pleuralbögen im Gegensatze zu den echten Rippen), welche die Leibeshöhle umschliessen. Die Rippen der übrigen Wirbelthiere (echte Rippen) sind abgegliederte und selbständig verknöchernde Theile von seitlichen, in die Seitenmuskulatur hineinragenden Fortsätzen (Rippenfortsätze oder Pleurapophysen), die von der Basis der Wirbelbögen entspringen. Bei den Quadrupeda entspringen von der Basis der oberen Bögen jederseits meist zwei Rippenfortsätze (Fig. 621, 622 r1 u. r2) über oder hinter einander an einem Wirbel; nur der eine derselben ist wohl entwickelt und als bewegliche Rippe abgegliedert (bei Sauropsida der obere, Fig. 621 r, bei Mammalia der untere, Fig. 622 r), mit der dann der andere weniger entwickelte verwächst (Fig. 621 r2) oder in Gelenkverbindung (Fig. 622 r1) steht (doppelköpfige Rippen). Nicht abgegliederte Rippenfortsätze (Fig. 619 q, 622 r1) oder die die Rippen tragenden Wurzelstücke derselben (Rippenträger, Fig. 621 q) werden Querfortsätze genannt.
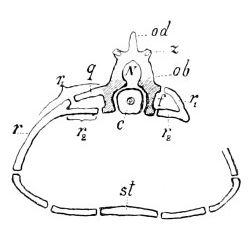
Fig. 621. Rückenwirbel (links), bez. Halswirbel (rechts) eines Reptils, schematisch.
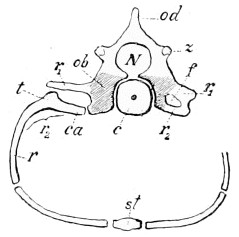
Fig. 622. Rückenwirbel (links), bez. Halswirbel (rechts) eines Säugethieres, schematisch.
c = Wirbelcentrum; ca = Rippenkopf (Capitulum); f = Foramen transversarium; ob = distal verwachsene obere Bögen; od = Dornfortsatz; r = Rippe; r1 = oberer Rippenfortsatz (q = Querfortsatz); r2 = unterer Rippenfortsatz; st = Sternum; t = Rippenhöcker (Tuberculum); z = Gelenkfortsatz; N = Rückenmarkscanal. Schraffirt sind die Theile der oberen Bögen, die mit dem Centrum an der Bildung des Wirbelkörpers theilnehmen.
In der Brustgegend der meisten höheren Wirbelthiere verwachsen die verbreiterten ventralen Enden der beiderseitigen Rippen mit einander und bilden das meist unpaare Brustbein oder Sternum (Fig. 621 u. 622 st)
Gelenkfortsätze (Zygapophysen) (Fig. 613–617), ein vorderes (z) und ein hinteres (z’) Paar, entspringen jederseits an den oberen Bögen derart, dass je ein solcher nach hinten gerichteter Fortsatz in Gelenkverbindung steht mit einem nach vorn gerichteten Fortsatze des folgenden Wirbels; dadurch wird eine festere Verkettung der einzelnen Wirbel unter einander erzielt, als durch die Verbindung der Wirbelkörper allein möglich ist. Bei allen landbewohnenden Wirbelthieren sind Gelenkfortsätze sehr wohl ausgebildet.
2. Der Schädel mit dem Visceralskelet.
Der Schädel bildet ursprünglich (wie jetzt noch bei Selachiern Fig. 623) eine Knorpelkapsel um das Gehirn, deren Ausläufer die Hauptsinnesorgane, Nase (N), Auge (A) und Ohr (O) umschliessen und schützen (Primordialcranium). Unter und hinter diesem Schädel liegen eine Anzahl paariger, ventral geschlossener Knorpelbögen, die die Mund- und Kiemenhöhle umschliessen (Visceralskelet), und von denen die beiden vordersten am Primordialcranium befestigt sind. Das Primordialcranium in Verbindung mit diesen beiden vordersten Visceralbögen bildet die Grundlage des Schädels der höheren Wirbelthiere.
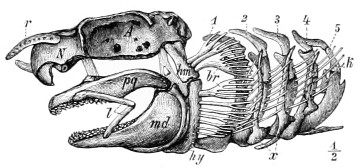
Fig. 623. Scyllium canicula Cuv. Recent; Schädel und Visceralskelet von der Seite. N = Nasenregion, A = Augenregion, O = Ohrregion des Primordialcraniums. br = Kiemenstrahlen des Hyoidbogens (Kiemenhautstrahlen); hm = Hyomandibulare; hy = Hyoideum; k = Kiemenstrahlen der Kiemenbögen; l = Lippenknorpel; md = Mandibula; pq = Palatoquadratum; r = Rostrum; x = Ectobranchialia; 1–5 = erster bis fünfter Kiemenbogen.
Der erste Visceralbogen (pq + md, Kieferbogen) bildet die ursprünglichen Kiefer und besteht aus einem oberen Stück, Palatoquadratum (pq, oder Palatopterygoid), und einem unteren damit articulirenden Stück, dem Unterkiefer (md, Mandibula oder Meckel’scher Knorpel). Das obere Stück des zweiten Visceralbogens (hm + hy, Hyoid- oder Zungenbeinbogens) ist das Hyomandibulare (hm), das den Kieferbogen mit dem Hinterende des Schädels verbindet und oft als Träger des Unterkiefers (Suspensorium) dient; das untere Stück des zweiten Bogens ist das Hyoideum (hy, Ceratohyale oder Zungenbein). Die folgenden Bögen (1–5) sind die eigentlichen Kiemenbögen, zwischen und vor denen sich seitlich die Kiemenspalten öffnen. Jeder Bogen des Visceralskeletes kann Kiemenstrahlen (br und k) tragen. Das Palatoquadratum und das Hyomandibulare sind oft mit dem Primordialcranium verschmolzen, mit welchem dann Unterkiefer und Zungenbein direkt articuliren (Autostylie bei Holocephali, Dipnoi, Quadrupeda).
Bei den meisten Wirbelthieren entstehen in der äusseren Kopfhaut Hautknochen (Deck- oder Belegknochen), die bei niederen Formen oft einen fast geschlossenen Kopfpanzer (Fig. 677) bilden, welcher bei höheren Formen zum Theil wieder schwindet; auch im Dach der Mundhöhle (Schädelbasis) entstehen derartige Knochen. Ein Theil der Deckknochen tritt in innige Verbindung mit dem knorpeligen Innenschädel, der stellenweise durch die auflagernden Deckknochen verdrängt und ersetzt oder ergänzt wird. Ferner kann der Knorpel des Innenschädels selbst von verschiedenen Ossificationspunkten aus in Knochen (Knorpelknochen) sich umwandeln. In Folge davon wird der ursprünglich knorpelige Schädel allmählich zum Theil oder ganz durch einen aus Deck- und Knorpelknochen bestehenden knöchernen Schädel ersetzt. Soweit die Deckknochen, ihrer ursprünglichen Aufgabe entsprechend, als Kopfpanzer die äussere Oberfläche des Kopfes bilden, sind sie äusserlich skulptirt, selbst oft schmelzbedeckt, während sie glatt und schmelzlos erscheinen, wo sie von dickeren Hautlagen bedeckt sind und wesentlich nur noch zur Ergänzung des Innenschädels dienen. Die einzelnen Schädelknochen sind entweder durch Bänder oder Gelenke beweglich oder durch Nähte unbeweglich mit einander vereinigt, oder sie können endlich ganz mit einander verschmelzen ohne Nähte (Synostose). Es lassen sich verschiedene Stufen in der Ausbildung des Wirbelthierschädels unterscheiden:
Innenschädel knorpelig, ohne Deckknochen (Chondropterygii — Fig. 623, 645).
Innenschädel knorpelig, mit einzelnen Deckknochen (manche Dipnoi und Heterocerci?).
Innenschädel knorpelig; Deckknochen bilden einen geschlossenen äusseren Kopfpanzer (Placodermi — Fig. 669, manche Dipnoi — Fig. 676, zahlreiche ältere Teleostomi — Fig. 677, zahlreiche Stegocephali — Fig. 741).
Hirnkapsel (auch andere Theile des Innenschädels) zum Theil verknöchert; Deckknochen bilden noch einen geschlossenen äusseren Kopfpanzer (Polypterus, Lepidosteus, viele Stegocephali — Fig. 756).
Hirnkapsel zum Theil verknöchert; der ursprüngliche Kopfpanzer ist mehr oder weniger lückenhaft (die meisten jüngeren Teleostomi, die modernen Amphibia, die meisten Reptilia — Fig. 730).
Hirnkapsel vollkommen verknöchert; der ursprüngliche Kopfpanzer ist sehr lückenhaft (Ophidia, Pterosauria, Aves, Mammalia).
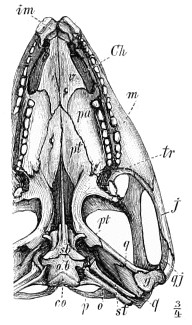
Fig. 624. Hatteria punctata Gray. Lebend. Neuseeland. Schädel von der Unterseite. Ch = Choanen; co = Hinterhauptsgelenk; g = Gelenkfläche für den Unterkiefer auf dem Quadratum; im = Intermaxillare; j = Jugale; m = Maxillare; o = Opisthoticum; ob = Basioccipitale; p = Parietale; pa = Palatinum; pt = Pterygoid; q = Quadratum; qj = Quadratojugale; sb = Basisphenoid mit vorderem schnabelförmigem Fortsatze, dem rudimentären Parasphenoid; st = Stapes; tr = Transversarium; v = Vomer.
Von wichtigeren Schädelknochen sind folgende zu nennen:
a. Durch Verknöcherung des Primordialcraniums entstehen (Fig. 625) die 4 Hinterhauptsbeine oder Occipitalia, nämlich 1 Occipitale basilare (ob — Basioccipitale), 2 Occ. lateralia (co — Exoccipitalia), 1 Occ. superius (o.s — Supraoccipitale), die alle an der Begrenzung des Foramen magnum (F) theilnehmen können; kommt es zur Bildung einer Gelenkverbindung (co) des Schädels mit dem ersten Wirbel (Atlas), so können sich daran die beiden Occipitalia lateralia (Fig. 625 co) und das O. basilare (Fig. 624 co) betheiligen. Aus der Basis des Primordialcraniums entsteht vor dem Occipitale basilare (o.b) das unpaare Basisphenoid (sb), manchmal auch ein Präsphenoid, und an den Seiten paarige Alisphenoide (as) und Orbitosphenoide; nach vorn entsteht das unpaare Ethmoid, in der Gehörregion das paarige Prooticum, Epioticum und Opisthoticum (Fig. 624 o).
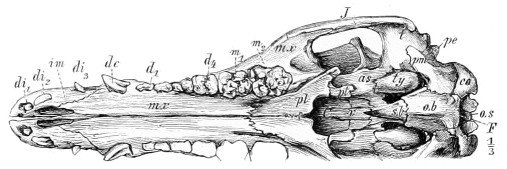
Fig. 625. Sus scrofa. Lebend. Schädel von unten. co = Hinterhauptshöcker an den Occipitalia lateralia; im = Intermaxillare; j = Jugale; mx = Maxillare; ob = Occipitale basilare; os = Occipitale superius; pe = Petrosum; pl = Palatinum; pm = Processus paramastoideus; pt = Pterygoid; sb = Basisphenoid; t = Temporale; ty = Tympanicum; C = Choanenöffnung; F = Foramen magnum; dc = Milcheckzahn; di1–3 = Milchschneidezähne; d1–4 = Milchbackzähne; m1–2 = Molaren.
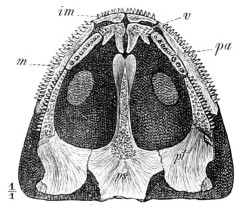
Fig. 626. Dawsonia polydens Fritsch. Carbon. Nyran, Böhmen. Schädel von unten. im = Intermaxillare; m = Maxillare; pa = Palatinum; ps = Parasphenoid; pt = Pterygoid; v = Vomer.
b. Als Deckknochen entsteht auf der Schädelbasis als Dach der Mundhöhle hinten das unpaare Parasphenoid (Fig. 626 ps), mächtig entwickelt bei Fischen und Amphibien, sonst rudimentär und in das Basisphenoid (Fig. 624 sb) aufgenommen, vorn (unter der Ethmoidalregion) der manchmal paarige Vomer (v — Pflugscharbein). Auf dem Palatoquadratum entsteht (Fig. 624 u. 626), jederseits an den Vomer (v) anschliessend, das Palatinum (pa — Gaumenbein), dem ein oder mehrere Pterygoide (pt u. tr — Flügelbeine) folgen, welche hinten an das Quadratum (q — Quadratbein) grenzen; dasselbe ist ein Knorpelknochen, der, aus dem Hinterende des Palatoquadratum entstanden, stets das Unterkiefergelenk (g) bildet. Das Schädeldach (Fig. 627) bedecken von hinten nach vorn, an das Supraoccipitale (o.s) anschliessend, die meist paarigen Parietalia (p — Scheitelbeine), Frontalia (f — Stirnbeine, oft mehrfach) und Nasalia (n — Nasenbeine). Vom Quadratbein (q) zum Parietale (p) zieht oft das Squamosum (Fig. 627 sq oder Mastoideum, über dem ursprünglichen, häufig verknöcherten Hyomandibulare). Am Unterkiefer entsteht jederseits von hinten nach vorn (Fig. 627) ein Articulare (art), Angulare (ang), Supraangulare (sa), Spleniale und das zahntragende Dentale (d); von diesen ist nur das das Gelenk bildende Articulare (art) ein Knorpelknochen. Der am reinen Knorpelschädel durch das Palatoquadratum dargestellte obere Mundrand wird bei den höheren Fischen und den Quadrupeda von Deckknochen gebildet (Fig. 624 u. 627), dem Prä- oder Intermaxillare (im — Zwischenkieferbein) und dem Maxillare (m — Oberkieferbein), die durch ein Jugale (j — Jochbein) und Quadratojugale (qj) sich mit dem Quadratum (q) verbinden können. Die Anzahl der Deckknochen des Kopfes ist durchschnittlich am grössten bei Fischen, geringer ist sie bei Reptilien, am kleinsten bei Säugern.
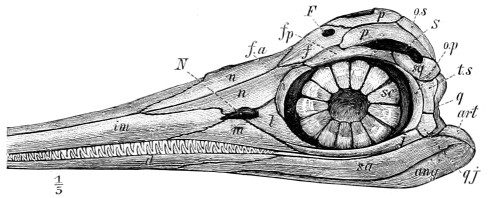
Fig. 627. Ichthyosaurus tenuirostris Conyb. Lias von Württemberg. Schädel von der Seite und von oben, etwas schematisch. ang = Angulare; art = Articulare; d = Dentale; F = Foramen parietale; f = Frontale; fa = Praefrontale; fp = Postfrontale; im = Intermaxillare; j = Jugale; l= Lacrymale; m = Maxillare; N = Nasenöffnung; n = Nasale; op = Postorbitale; os = Occipitale superius; p = Parietale; q = Quadratum; qj = Quadratojugale; S = obere Schläfengrube; sa = Supraangulare; sc = Scleroticalring; sq = Squamosum; t.s = Supratemporale.
Die Kiemenbögen bilden sich bei luftathmenden Wirbelthieren mehr und mehr zurück.
3. Das Gliedmassenskelet.
Man unterscheidet paarige (seitliche) und unpaare (mediane) Gliedmassen. Die (nur in einigen Fällen vollständig rückgebildeten) paarigen Gliedmassen, ein vorderes und ein hinteres Paar, sind knorpelig angelegt und können später theilweise oder ganz durch Knochen ersetzt sein. Sie bestehen aus einem im Rumpfe gelegenen Gliedmassengürtel (Fig. 629 co + sc), dem Schulter- und Beckengürtel, und aus den frei aus dem Rumpfe hervorragenden äusseren Gliedmassen, die durch ein Gelenk (Schulter- und Hüftgelenk) mit dem Gürtel verbunden sind. Mit dem Schultergürtel, aber nicht mit dem Beckengürtel können Deckknochen von beträchtlicher Ausdehnung in Beziehung treten. Während der Beckengürtel bei den Quadrupeda fast immer mit gewissen Wirbeln (Sacralwirbel — Fig. 628) sich verbindet, geschieht das niemals bei Fischen.
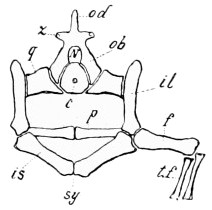
Fig. 628. Beckengürtel und Sacralwirbel eines Reptils; schematisch. N = Rückenmarkscanal. Theile des Sacralwirbels: c = Wirbelcentrum; ob = oberer Bogen; od = Dornfortsatz; q = Querfortsatz, der das Becken trägt; z = Gelenkfortsatz. Theile des Beckens: il = Ileum; is = Ischium; p = Pubis; sy = Symphyse des beiden Ischien. Aeussere Gliedmassen: f = Femur; tf = Tibia und Fibula.
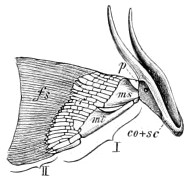
Fig. 629. Schultergürtel und rechte Brustflosse von Heptanchus. co + sc = Schultergürtel; fs = Flossenstrahlen; ms = Mesopterygium; mt = Metapterygium; p = Propterygium; r = Radialia; I = primäre, II = secundäre Flosse.
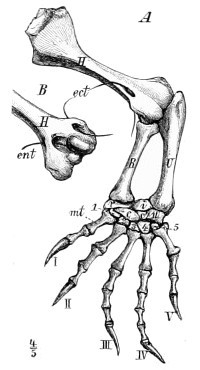
Fig. 630. Linkes Vorderbein von Hatteria punctata Gray. Neuseeland. A von oben, B von unten. H = Humerus; ect u. ent = Foramina epicondyloidea. R = Radius; U = Ulna; c, c’ = Centralia; i = Intermedium; r = Radiale; u = Ulnare; 1–5 = Carpalia des 1. bis 5. Fingers; mt = Metacarpale; I–V = Endphalangen.
Die äusseren Gliedmassen können wesentlich zweierlei Art sein, Flossen oder Beine:
Flossen (Fig. 629) sind zur Bewegung im Wasser ausgebildete Gliedmassen (häufig vielstrahlig), deren einzelne Skelettheile mit einander nicht in Gelenkverbindung stehen; sie tragen äussere, der Haut angehörige, hornige oder knöcherne Flossenstrahlen (Fig. 629 fs), mit diesen ein breites Ruder bildend.
Beine (Fig. 630, incl. Flügel) sind wenigstens ursprünglich zur Bewegung auf dem Lande eingerichtete fünfzehige Gliedmassen, die aus einer Anzahl von gelenkig mit einander verbundenen Abschnitten bestehen und niemals Flossenstrahlen tragen.
Unpaare Gliedmassen (Flossen) kommen bei Wasserbewohnern vor, sind bei Fischen stets, bei den höheren Wirbelthieren nie mit Flossenstrahlen und Flossenträgern versehen.
4. Die Zähne.
Zähne sind verkalkte Papillen der Mundschleimhaut, die zum Ergreifen und Zerkleinern der Nahrung dienen. Wie sich bei Haien nachweisen lässt, sind dieselben als umgebildete Placoidschuppen aufzufassen. Zähne können bei Fischen auf sämmtlichen die Mund- und Kiemenhöhle begrenzenden Skelettheilen in dichten Haufen auftreten; bei Amphibien (Fig. 626) und Reptilien (Fig. 624) sind sie auf die Knochen der Mundhöhle beschränkt, wo sie wenigstens an den Kieferrändern nie mehr als eine Reihe bilden, trotzdem sie noch in bedeutender Zahl vorhanden sein können; bei den Säugern (Fig. 625) finden sich Zähne nur noch in einer Reihe, nur an den Kieferrändern und fast stets in beschränkter Anzahl; sie verschwinden oft auch ganz.
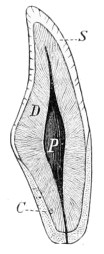
Fig. 631. Längsschnitt durch einen Säugethierzahn mit echtem Dentin, schematisch. C = Cement; D = Dentin; P = einfache Pulpahöhle; S = Schmelz.
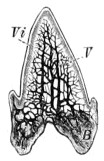
Fig. 632. Schematischer Längsschnitt durch einen Selachierzahn mit typischem Vasodentin (V, mit weiten Haversischen Canälen). B = Wurzel; Vi = Vitrodentin.
An den Zähnen ist der frei hervorragende Theil als Krone von der Wurzel zu unterscheiden. Die Krone kann kegel- oder pfriemenförmig sein und spitz enden (Fangzähne, einfach oder mehrspitzig) oder sie ist schaufel- oder meiselförmig (Schneidezähne), oder verbreitert, polster- oder plattenförmig (Mahlzähne, oft mit Leisten und Höckern versehen). Die Wurzel kann einfach oder getheilt sein.
Die Hauptmasse des Zahnes besteht aus Dentinsubstanz (Zahnbein), das die Pulpa umschliesst; letztere kann in einer einfachen grossen Höhle (echtes Dentin — Fig. 631), oder in einer Anzahl von weiten (Haversischen) Canälen (Vasodentin — Fig. 632) enthalten sein. Die Krone ist gewöhnlich mit einer Schmelzschicht (Fig. 631 S — Email) bedeckt; an der Wurzel kann sich mehr oder weniger reichliches Knochengewebe (Fig. 631 C — Cement, selten auch die Krone umgebend) entwickeln. Das eigentliche Dentin (Fig. 631 D) ist sehr gleichmässig und wird aus etwa parallel laufenden, sehr feinen Röhrchen gebildet.
Die Zähne können lose, nur durch Weichtheile befestigt, den sie tragenden Skelettheilen aufsitzen; mitunter stehen sie in einer gemeinschaftlichen Rinne (holcodont), oder jeder Zahn steckt in einer besonderen Vertiefung, der Alveole (thecodont); die Zähne können aber auch mehr oder weniger fest mit dem sie tragenden Knochen verwachsen sein (acrodont; pleurodont heissen seitlich festgewachsene Zähne). Zahnwechsel kann das ganze Leben hindurch stattfinden (polyphyodont); die neuen Zähne entstehen dabei unter oder neben den alten; doch können auch die einmal entstandenen Zähne das ganze Leben hindurch ausdauern, ohne Zahnwechsel (monophyodont). Zähne mit grosser Pulpahöhle, in der oft der Ersatzzahn sich entwickelt, heissen cölodont, ohne solche sind sie pleodont. Sind die Zähne in einem Gebiss einander ähnlich, so ist dasselbe isodont, sind sie sehr verschieden von einander, anisodont.
Die Wirbelthiere lassen sich in sechs Klassen eintheilen:
A.Ohne paarige Gliedmassen.
a.Leptocardii, mit Chorda, doch ohne weitere feste Skeletbildung, ohne Schädel und Gehirn.1. Klasse: Leptocardii.
b.Cyclostomi, mit Chorda und Knorpelskelet, mit Schädel und kieferlosem Saugmund.2. Klasse: Cyclostomi.
B.Mit paarigen (selten rudimentären) Gliedmassen, mit Schädel und Unterkiefer.
a.Pisces; paarige Gliedmassen sind als Flossen ausgebildet und mit Flossenstrahlen versehen; ohne Sacralwirbel (p. 529).3. Klasse: Pisces.
b.Quadrupeda; paarige Gliedmassen sind als fünfzehige Beine ausgebildet oder auf solche zurückzuführen; ohne Flossenstrahlen; mit Sacralwirbeln (p. 587).
α.Hinterhauptsgelenk doppelt; Parasphenoid gross; ein Sacralwirbel.4. Klasse: Amphibia.
β.Hinterhauptsgelenk einfach; Parasphenoid fehlt oder rudimentär; zwei oder mehr Sacralwirbel.5. Klasse: Sauropsida.
γ.Hinterhauptsgelenk doppelt; Parasphenoid fehlt; zwei oder mehr Sacralwirbel.6. Klasse: Mammalia.
Die beiden ersten Klassen sind nur lebend bekannt, während die vier übrigen auch fossil von grösster Wichtigkeit sind.
Die Amphibien müssen in vielfacher Hinsicht als Uebergangsformen zwischen den Fischen und den höheren Wirbelthieren (Sauropsida und Mammalia) angesehen werden. Obwohl die nahen, besonders auch in der Entwicklungsgeschichte ausgesprochenen Beziehungen, welche die Amphibia mit den Pisces verbinden (Ichthyopsida), durchaus nicht verkannt werden dürfen, scheint es doch gerechtfertigt, die Amphibia mit den Sauropsida und Mammalia als eine zusammengehörige Gruppe, Quadrupeda (p. 587), zu betrachten, deren Athmungs- und Bewegungsorgane dem Leben auf dem festen Lande angepasst sind, und sie den Pisces (p. 529) gegenüber zu stellen, deren Athmungs- und Bewegungsorgane sie als reine Wasserthiere kennzeichnen.
Folgende Uebersicht enthält die wichtigsten osteologischen Unterschiede zwischen diesen beiden Wirbelthiergruppen:
Pisces.Quadrupeda.
Das Intercentrum nimmt einen beträchtlichen Antheil am Aufbau aller Wirbelkörper (Fig. 611 u. 620).Das Intercentrum betheiligt sich gar nicht oder in ganz unbedeutender Weise am Aufbau der Wirbelkörper (Fig. 615, 621, 622) (einige Stegocephalen ausgenommen).
Die Rippen nehmen grösstentheils ihre Entstehung von den unteren Bögen (Fig. 620).Die Rippen (oft Doppelrippen) nehmen meist ihre Entstehung von den oberen Bögen (Fig. 621 u. 622).
Kein Sternum.Meist ein Sternum (Fig. 621 u. 622).
Erster Wirbel nicht wesentlich von den folgenden verschieden.Erster Wirbel (Atlas) meist viel einfacher als die folgenden.
Keine Sacralwirbel.Sacralwirbel vorhanden (Fig. 628; ausgenommen einige Formen mit rückgebildeten Hintergliedmassen).
Untere Dornfortsätze meist gegen das Schwanzende vergrössert.Dornfortsätze verschwinden stets gegen das Ende der Wirbelsäule.
Schädel meist unbeweglich mit der Wirbelsäule verbunden.Schädel stets durch einen oder zwei Gelenkköpfe beweglich mit der Wirbelsäule verbunden.
Sind Deckknochen entwickelt, so findet sich stets ein knöcherner Kiemendeckel (Fig. 644 k).Kein knöcherner Kiemendeckel.
Kiemenbögen stets wohlentwickelt (mindestens drei).Kiemenbögen bei Erwachsenen rudimentär (höchstens drei) oder fehlend.
Becken sehr klein (Fig. 645).Becken wohlentwickelt (Fig. 628; in manchen Fällen rückgebildet).
Paarige Gliedmassen sind mit Flossenstrahlen versehene Flossen (Fig. 629).Paarige Gliedmassen sind pentadactyle Beine ohne Flossenstrahlen (Fig. 630), oder von solchen abzuleiten.
Unpaare Flossen stets vorhanden, mit Flossenstrahlen und Flossenträgern versehen (Fig. 643, 645).Unpaare Flossen selten vorhanden, nie mit Flossenstrahlen oder Flossenträgern versehen.
Pisces finden sich schon im obersten Silur und sind von da an in allen Formationen reich vertreten. Amphibia erscheinen zuerst im Carbon, ihre Blüthezeit erreichen sie im Perm, sind auch noch in der Trias vorhanden; im Jura und in der Kreide fehlen sie fast ganz, erscheinen wieder im Tertiär und sind in der Gegenwart wohl vertreten. Die ersten Sauropsida kommen im Perm vor; während der ganzen Secundärzeit sind sie die herrschenden Landwirbelthiere, aber nur einzelne Gruppen überleben die Kreidezeit, besonders die Vögel, um ihre Blüthezeit im Tertiär und in der Gegenwart zu erreichen. Die jüngste und höchstentwickelte Klasse ist die der Mammalia, deren älteste Vertreter aus der oberen Trias stammen, die aber erst seit Beginn des Tertiär eine hervorragende Rolle spielen und von da an die wichtigsten Landwirbelthiere darstellen.
1. Klasse: Leptocardii.
Fossil unbekannt.
Amphioxus lanceolatus Yarrel. Das Lanzettfischchen findet sich lebend in verschiedenen Meeren.
2. Klasse: Cyclostomi.
Fossil unbekannt. Die früher als Cyclostomenzähne gedeuteten Conodonten dürften auf Würmer zurückzuführen sein (s. p. 117).
Die bekannteste Gattung ist Petromyzon Art.
P. fluviatilis L. Das Neunauge lebt in Meeren und Flüssen von Europa.
3. Klasse: Pisces oder Fische.
Litteratur über Fische.
a. Ueber lebende Fische.
Cope, E. Classification of fishes in Proceed. Amer. Assoc. Adv. Sc. 1871.
Cuvier et Valenciennes. Histoire naturelle des poissons. Paris 1828–49. 22 Bände.
Günther, A. Catalogue of the fishes in the British Museum. London 1859–70. 8 Bände.
—— An introduction of the study of fishes. Edinburgh 1880.
Müller, J. Ueber den Bau und die Grenzen der Ganoiden und das natürliche System der Fische. In: Abh. Berl. Akademie für 1844 (1846).
b. Ueber fossile Fische.
Agassiz, L. Recherches sur les poissons fossiles. Neuchâtel 1833–43. 5 Bände.
—— Monographie des poissons fossiles du vieux grès rouge ou système dévonien. Neuchâtel 1844.
Heckel, J. J. Beiträge zur Kenntniss der fossilen Fische Oesterreichs. Wien 1849 u. 1856.
Huxley, Th. Preliminary essay upon the systematic arrangement of the fishes of the Devonian Epoch. Mem. geol. Survey Un. Kingdom. 1861.
Newberry, J. S. Description of fossil fishes. Geolog. Survey of Ohio. Palaeontology. Vol. I u. II. Columbus 1873.
Pander, Ch. H. Monographie der fossilen Fische des silurischen Systems des russischbaltischen Gouvernements. St. Petersburg 1856.
Pictet, F. J. Description de quelques poissons fossiles du Mont Liban. Genève 1850.
Pictet et Humbert. Nouv. rech. s. l. poissons foss. du M. Liban. 1866.
Quenstedt, F. A. Handbuch der Petrefaktenkunde. 3. Aufl. Tübingen 1885.
Thiollière, V. Description des poissons foss. prov. d. gis. corall. du Jura dans le Bugey. Paris et Lyon 1854 und 1873.
Traquair, R. H. The Ganoid fishes of the British Carboniferous formations. Palaeontograph. Society 1877.
Wagner, A. Beiträge zur Kenntniss der in den lithographischen Schiefern abgel. urweltl. Fische. Abh. k. bayer. Akad. Bd. VI 1851 und Bd. IX 1861–63.
Woodward, A. G. Catalogue of the fossil Fishes in the British Museum. Part I. London 1889.
Zittel, K. Handbuch d. Paläontologie. 1. Abth. III. Bd. München u. Leipzig 1887 ü. 1888. [Daselbst ist auch weitere Litteratur über fossile Fische nachzuschlagen.]
Fische sind ausschliesslich Wasserthiere, die stets Kiemen besitzen, und deren paarige Gliedmassen mit Flossenstrahlen versehene Flossen bilden. Unpaare Gliedmassen sind immer vorhanden und ebenfalls stets durch Flossenstrahlen gestützt. Der mächtig entwickelte Schwanz endet mit einer senkrechten Schwanzflosse. Kiemenbögen sind immer wohl ausgebildet.
Bei den älteren, vorliasischen Fischen ist das Innenskelet wenig oder gar nicht verknöchert, während später, besonders seit der Kreidezeit, Fische mit vollständig verknöchertem innerem Skelet (Fig. 720) immer mehr überwiegen. Dagegen zeigen die älteren Formen (ausser den Chondropterygii) meist sehr umfangreiche Verknöcherung der Hautgebilde (Hautpanzer, Fig. 683), die bei den jüngeren Formen sehr zurücktritt.
Hautgebilde der Fische.
Die Haut der Fische ist nur selten ganz nackt; meist sind dieselben mit Schuppen bedeckt, die oft reichliche Verknöcherung zeigen und mitunter durch grössere Knochenplatten ersetzt sind.
Unter den Schuppen sind zu unterscheiden:
1. Placoidschuppen, meist sehr kleine Hautverknöcherungen, die körnchen-, kegel-, stern- oder blattförmige Gestalt zeigen und ein mehr oder weniger dichtes Pflaster auf der Haut bilden, welche sich in Folge davon eigenthümlich rauh anfühlt (Chagrin); mitunter tragen diese Schüppchen einen spitzen nach hinten gekrümmten Stachel (Fig. 633). Die Placoidschuppen zeigen eine aus verknöchertem Bindegewebe bestehende Basalplatte (Fig. 634 B), auf der sich der aus Dentin oder Vasodentin (V, vgl. p. 526) bestehende obere Theil der Schuppe erhebt (s. auch »Zähne« p. 532). Von ihnen sind die meisten übrigen Formen von Hautverknöcherungen abzuleiten.
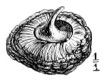
Fig. 633. Auffallend grosse Placoidschuppe mit Stachel von Raja.
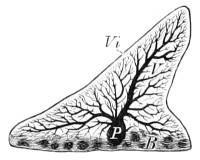
Fig. 634. Längsschnitt durch eine Placoidschuppe von Scymnus lichia. B = Basalplatte; V = Vasodentin mit baumförmig verästelten Canälen und kleiner Pulpahöhle (P); Vi = Vitrodentin.
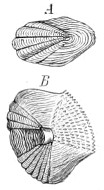
Fig. 635. A = Cycloidschuppe von Gadopsis. B = Ctenoidschuppe von Lethrinus.
2. Ganoidschuppen sind verhältnissmässig grosse, meist in sehr regelmässigen Reihen angeordnete Schuppen von beträchtlicher Dicke, die aus einem knöchernen Basaltheil, aus Dentinsubstanz und einer oft sehr dicken und dann stark glänzenden äusseren Schmelzschicht bestehen; letztere ist häufig zierlich skulptirt (Fig. 636), trägt aber nie grössere stachelähnliche Fortsätze. Ganoidschuppen sind meist rhombisch, der Hinterrand manchmal gezähnt (Fig. 636); sie sind oft durch Leisten und Zapfen auf der Innenseite gelenkig mit einander verbunden (Fig. 637 u. 638) und stellen dann ein äusserst regelmässiges Pflaster dar, das panzerartig den Körper umhüllt (Fig. 644); doch kommen auch rundliche (cycloide) Ganoidschuppen vor, die dachziegelartig über einander liegen (Fig. 680).
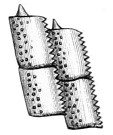
Fig. 636. Dapedius Leachii Ag. Unterer Lias. Lyme Regis. Ganoidschuppen von der Aussenseite.
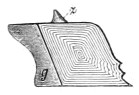
Fig. 637. Lepidotus semiserratus Ag. Lias. Whitby. Ganoidschuppe von der Aussenseite. g = glatte, von der Nachbarschuppe überdeckte Fläche; z = Gelenkzapfen.
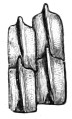
Fig. 638. Gelenkig verbundene Ganoidschuppen von Palaeoniscus von der Innenseite mit Leisten und Zapfen.
3. Cycloid- und Ctenoidschuppen sind dünne, durchscheinende, meist rundliche Schuppen, die, wenn sie nicht rudimentär sind, dachziegelartig sich bedecken und in ziemlich regelmässigen Reihen angeordnet liegen. Sie sind nur in sehr geringem Maasse verkalkt, daher biegsam und erscheinen gewöhnlich dicht concentrisch gestreift mit einer kleinen Anzahl radiär verlaufender Linien. Leisten oder Zapfen auf der Innenseite sind nie vorhanden; ebenso fehlt die äussere Schmelzbedeckung. Der Hinterrand ist entweder glatt (Cycloidschuppen — Fig. 635 A) oder gezähnt (Ctenoidschuppen — Fig. 635 B); auch der freiliegende Theil der Oberfläche kann bei Ctenoidschuppen von Zähnchen bedeckt sein (Fig. 635 B).
Placoidschuppen sind die ursprünglichsten Formen von Hautverknöcherungen, die sich wesentlich bei Chondropterygii finden; die meisten übrigen Formen von Hautverknöcherungen sind als vergrösserte bez. mit einander verwachsene Placoidschuppen zu betrachten. Ganoidschuppen sind als plattenartig ausgebildete Placoidschuppen aufzufassen; sie sind charakteristisch für die meisten der älteren Euichthyes, während die den moderneren Teleostomi eigenthümlichen Cycloid- und Ctenoidschuppen aus Ganoidschuppen herzuleiten sind, deren Verkalkung ganz oder grösstentheils unterbleibt; zwischen letzteren finden sich in der That alle Uebergänge.
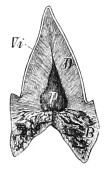
Fig. 639. Längsschnitt (schematisch) durch einen Selachierzahn mit eigentlichem Dentin (D) und einfacher Pulpahöhle (P). B = Wurzel; Vi = Vitrodentin.
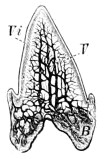
Fig. 640. Längsschnitt durch einen Selachierzahn mit typischem Vasodentin (V, mit weiten anastomosirenden Canälen). B = Wurzel; Vi = Vitrodentin.
Zähne können bei den Fischen an sämmtlichen die Mund- und Kiemenhöhle begrenzenden Skelettheilen auftreten; sie können leicht beweglich sein oder sind mit ihrer Unterlage fest durch Ligament verbunden oder endlich innig damit verwachsen. Bei manchen Haien sind die Zähne selbst der Gestalt nach nicht von den Placoidschuppen der Haut zu unterscheiden; der feinere Bau ist ebenfalls der gleiche. Zähne und Schuppen müssen daher als homologe Bildungen angesehen werden. Auch bei den Zähnen (Fig. 639, 640) ist ein aus Knochengewebe bestehender Basaltheil (B) vorhanden. Der übrige Theil des Zahnes besteht aus eigentlichem Dentin (Fig. 639) oder aus Vasodentin, letzteres mit groben, gewöhnlich anastomosirenden Haversischen Canälen (Fig. 640); die Krone ist meist von einer mehr oder weniger dicken Schmelzschicht bedeckt; bei Chondropterygii ist der Schmelz nicht durch eine scharfe Grenze von der Dentinsubstanz unterschieden und wird oft Vitrodentin (Vi) genannt.
Die Zähne sind meist nadel- oder kegelförmig, nur zum Festhalten geeignet (Fangzähne), selten meiselförmig (Schneidezähne) oder bohnen- und plattenförmig (Mahlzähne). Sehr häufig finden sie sich in grosser Menge zu Bürsten (hechelförmig), Polstern, Bändern und Pflastern vereinigt, oder sie stehen wenigstens in mehreren Reihen hinter einander, seltener einreihig oder einzeln. Aeltere ausfallende Zähne werden fortwährend durch neben ihnen entstehende junge Zähne ersetzt.
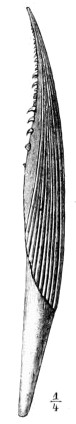
Fig. 641. Hybodus reticulatus Ag. Rückenflossenstachel (Ichthyodorulit). Oberer Lias (ε). Ohmden in Württemberg.
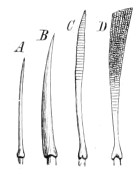
Fig. 642. Flossenstrahlen. A, B hart und ungegliedert; C einfach gegliedert; D fächerförmig gegliedert.
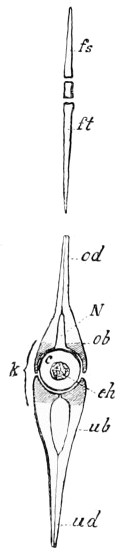
Fig. 643. Schwanzwirbel eines Fisches, schematisch. N = Rückenmarkscanal; c = Chordascheide; ch = Chorda dorsalis; ob = oberer Wirbelbogen; od = oberer Dornfortsatz; ub = unterer Wirbelbogen; ud = unterer Dornfortsatz. Schraffirt sind die Theile der Wirbelbögen, die an der Bildung des Wirbelkörpers (k) theilnehmen. ft = Flossenträger; fs = Flossenstrahl.
Als Ichthyodoruliten (Fig. 641) werden eigenthümliche Stacheln bezeichnet, die nur niederen Fischformen (besonders primitiveren Chondropterygii und Acanthodidae) zukommen, oft sehr bedeutende Grösse erreichen und gewöhnlich isolirt gefunden werden. Meist gehören sie dem Vorderrande der unpaaren Flossen an; ihr feinerer Bau gleicht durchaus dem der Zähne und Placoidschuppen; in der Regel (bei allen Selachii) stecken sie nur lose im Fleisch und zeigen daher sehr selten ein Gelenk an der Basis. Fast sämmtliche paläozoische Ichthyodoruliten sind stark skulptirt oder bedornt, die späteren meist glatt.
Zu den Hautgebilden gehören auch die den äusseren Theil der paarigen und unpaaren Flossen stützenden Flossenstrahlen (Fig. 644), welche den Fischen eigenthümlich sind. Sie finden sich zuerst als feine Hornfäden (Fig. 646 A fs, Chondropterygii und viele Dipnoi) in ausserordentlicher Anzahl. Bei höheren Fischen sind dieselben ersetzt durch knöcherne Strahlen (Fig. 642) in geringerer Zahl, welche entweder durch Quernähte gegliedert (C) und dabei oft fächerförmig getheilt sind (D u. Fig. 651 c — weiche oder gegliederte Flossenstrahlen) oder durch einfache, in eine Spitze endende Stacheln dargestellt sind (A, B — harte oder ungegliederte Flossenstrahlen oder Stachelstrahlen). Harte und weiche Strahlen finden sich oft in der nämlichen Flosse und zwar sind dann stets die vorderen Strahlen ungegliedert. Das Vorhandensein mehrerer harter Strahlen in einer Flosse ist charakteristisch für die Mehrzahl der Physoclysti (Fig. 719 u. 720 — Acanthopteri), der modernsten Fischgruppe.
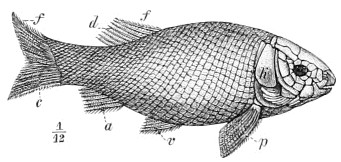
Fig. 644. Lepidotus Elvensis Blv. Oberer Lias (ε). Holzmaden. a = Analflosse; c = Caudalflosse (hemiheterocerk); d = Dorsalflosse; p = Pectoralflosse; v = Ventralflosse; f = Fulcra (am Vorderrande aller Flossen); k = Kiemendeckel.
Gliedmassen der Fische.
Allen Fischen kommen unpaare senkrechte Flossen (Fig. 644) zu, die man ihrer Lage nach unterscheidet als Rücken- oder Dorsalflosse (d), Schwanz- oder Caudalflosse (c) und After- oder Analflosse (a — hinter dem After; vgl. auch Fig. 645). Selten hängen diese dreierlei Flossen noch ununterbrochen zusammen, den ganzen Rücken (Fig. 645 u. 674 d u. c) und die Ventralseite des Schwanzes einnehmend, wie es wenigstens ontogenetisch der ursprüngliche Zustand ist; ihre Ausdehnung ist sehr verschieden[D]. Rücken- und Afterflosse (Fig. 645 an) können auch in mehrere Abschnitte zerfallen, selten fehlt eine dieser Flossen ganz. Stets sind die unpaaren Flossen durch Flossenstrahlen (Fig. 643 u. 645 fs) gestützt, welche meist auf Flossenträgern (ft, ft’; vgl. auch Fig. 714) ruhen, mit denen sie in Gelenkverbindung (Fig. 642) stehen können; die Flossenträger, oft in mehrere Stücke gegliedert, lehnen sich gewöhnlich an die Dornfortsätze (Fig. 643 od) der Wirbel an, erscheinen aber selten als deren unmittelbare Fortsetzung (Dipnoi).
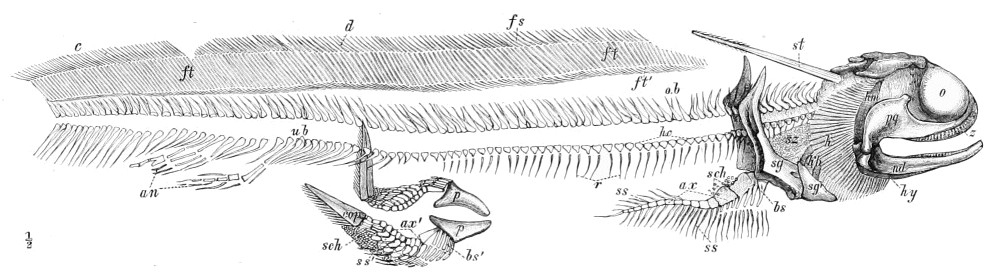
Fig. 645.
Pleuracanthus Decheni
Goldf. Rothliegendes. Lebach bei Saarbrücken. Knorpelskelet restaurirt (Schwanzende fehlt).
Schädel und Visceralskelet: o = Augenregion; pq = Palatoquadratum; nd = Mandibula; hm = Hyomandibulare; hy = Hyoideum; k = Kiemenstrahlen am Zungenbeinbogen; kb = Kiemenbögen; z = Kieferzähne; sz = Schlundzähne; st = Nackenstachel.
Wirbelsäule: o.b = obere Bögen; hc = Intercentra, die Basaltheile der unteren Bögen in der Rumpfregion; r = Rippen; ub = untere Bögen in der Schwanzregion mit Dornfortsätzen. (Chordascheide ist nicht erhaltungsfähig.)
Unpaare Flossen: d = Dorsalflosse; c = Caudalflosse; an = 2 Analflossen; fs = Flossenstrahlen; ft, ft’ = Flossenträger.
Vordere Extremität: sg, sg’ = Schultergürtel; ax = vielgliedrige Hauptachse der Brustflosse; ss = Radien (zweizeilig); bs = Nebenstrahlen; sch = Schuppen.
Hintere Extremität: p = Becken; ax’ = vielgliedrige Hauptachse der Bauchflosse; ss’ = Radien (einzeilig); bs’ = Nebenstrahlen; sch = Schuppen; cop = männliches Begattungsorgan.
Von den paarigen Gliedmassen (Fig. 644) stehen die Brust- oder Pectoralflossen (p) mit dem Schultergürtel, die Bauch- oder Ventralflossen (v) mit dem kleinen Becken in Gelenkverbindung (vgl. auch Fig. 645). Der Schultergürtel, ursprünglich nur aus einem Paar oft ventral verwachsener Knorpelspangen bestehend (primärer Schultergürtel der Chondropterygii Fig. 646 A, co + sc u. 645 sg, sg’), wird bei den Euichthyes zum grösseren Theile von Deckknochen gebildet (secundärer Schultergürtel — Fig. 646 B u. C cl, pcl, scl, pt) und steht dann mit dem Schädel in Verbindung; gewöhnlich verknöchert dabei auch der primäre Theil des Schultergürtels (co und sc).
Das gewöhnlich bauchständige kleine Becken (Fig. 645 p) tritt nie mit Wirbeln in directen Zusammenhang.
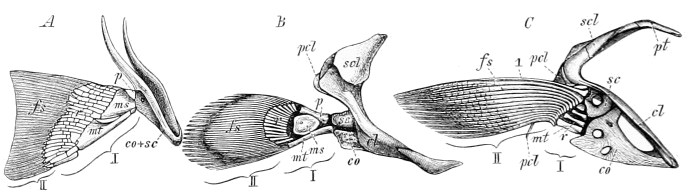
Fig. 646.
Schultergürtel
und
Brustflossen
von
A
Heptanchus
(Selachier),
B
Polypterus
(Crossopterygier mit quastenartiger Brustflosse) und
C
Salmo lacustris
(Physostome mit fächerartiger Brustflosse).
Primärer Schultergürtel: co = Coracoideum; sc = Scapulare.
Secundärer Schultergürtel: cl = Clavicula; pcl = Postclavicula; scl = Supraclavicula; pt = Posttemporale (zur Befestigung am Schädel).
Primäres Flossenskelet (= I): p = Propterygium; ms = Mesopterygium; mt = Metapterygium; r = Radien.
Secundäres Flossenskelet (= II): fs = Flossenstrahlen; 1 = erster Flossenstrahl.
Die freien Flossen werden auch hier durch Flossenstrahlen (Fig. 646 fs) gestützt, die bei den niederen Fischen von einem wohlentwickelten, meist knorpeligen primären Flossenskelet (Fig. 646 I) getragen werden. Dasselbe besteht entweder (Fig. 645) aus einer langen, vielgliedrigen Hauptachse (ax, ax’) mit ein- oder zweizeilig angeordneten Seitenstrahlen (ss, ss’ — Radien), dem Archipterygium; einige Nebenstrahlen (bs, bs’) können direct vom Gliedmassengürtel (sg u. p) entspringen (quastenförmige Flosse mit langer Achse bei Proselachii, Dipnoi und Crossopterygii). Oder es bilden sich durch umfangreiche Verwachsungen wenige plattenförmige Stücke (Basalplatten — Fig. 646 A; p, ms, mt), denen Radien (r) wesentlich einzeilig aufsitzen (Selachii und Holocephali); ähnlich sind die quastenförmigen Flossen mit kurzer Achse mancher Crossopterygii (Fig. 646 B). Bei den übrigen Teleostomi (Fig. 646 C) findet sich das primäre Flossenskelet (I) allmählich immer kümmerlicher ausgebildet unter sehr bedeutender Reduction der Radienzahl (r), und dafür das secundäre Flossenskelet (II) um so mächtiger entwickelt, das aus den knöchernen Flossenstrahlen (fs) besteht, von denen wenigstens der äusserste (1) direct mit dem Schultergürtel articulirt (fächerförmige Flossen).
Wirbelsäule der Fische.
Die Wirbelsäule kann bei den Fischen die verschiedensten Stufen der Ausbildung aufweisen (vgl. p. 516–518). Bei den Chondropterygii kann der ursprüngliche Knorpel mehr oder weniger reichlich Kalkkörnchen enthalten; unter den Euichthyes ist bei den höchsten Formen der Knorpel vollständig durch Knochen ersetzt, und die Bögen sind mit dem Centrum verschmolzen (Fig. 720). Die Wirbelkörper sind gewöhnlich amphicöl, bei den niedersten Formen unterbleibt aber die Gliederung der Chordascheide ganz (Fig. 649); Fischwirbel sind meist leicht kenntlich an tiefen Gruben, die sie auf beiden Seiten zeigen (Fig. 662 B).
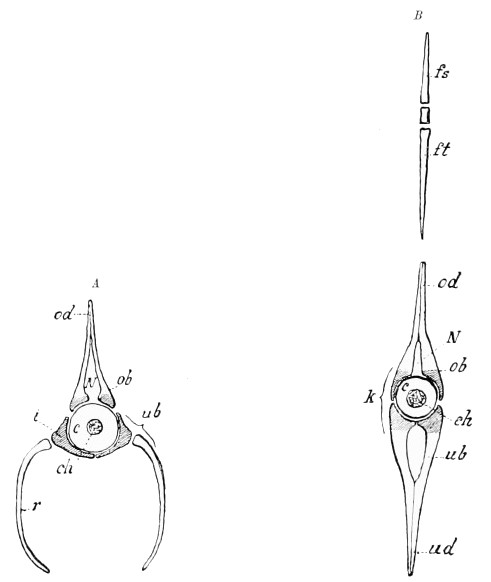
Fig. 647. A Rumpfwirbel, B Schwanzwirbel eines Fisches, schematisch. N = Rückenmarkscanal; c = Chordascheide; ch = Chorda dorsalis; i = Basaltheil des unteren Bogens (Intercentrum); ob = oberer Wirbelbogen; od = oberer Dornfortsatz; r = Rippe (Pleuralbogen); ub = unterer Wirbelbogen; ud = unterer Dornfortsatz. Schraffirt sind die Theile der Wirbelbögen, die an der Bildung des Wirbelkörpers theilnehmen. ft = Flossenträger; fs = Flossenstrahl.
An der Wirbelsäule der Fische ist nur Rumpf- und Schwanzregion zu unterscheiden. Die Rumpfwirbel tragen fast immer bewegliche Rippen (Fig. 645 u. 647 r), während die Schwanzwirbel neben den oberen auch untere Dornfortsätze zeigen (Fig. 645 ub u. 647 ud). Die vordersten Wirbel verwachsen manchmal mit einander zu einem unbeweglichen Stücke; nie vereinigen sich Rippen zur Bildung eines Sternums und nie bilden sich Sacralwirbel aus als Träger des Beckens. Die Rippen der Fische sind entweder seitliche, zwischen die Rumpfmuskulatur hineinragende Anhänge der unteren Bögen oder sie sind (als Pleuralbögen Fig. 647 A r) das abgegliederte Ende der unteren Bögen (ub) selbst, während, wie auch an den Schwanzwirbeln (Fig. 647 B), die Basis der unteren Bögen (i, Intercentrum) beträchtlichen Antheil an der Bildung aller Wirbelkörper nimmt gleich der Basis der oberen Bögen.
Von ganz besonderer Wichtigkeit ist der letzte Abschnitt der Wirbelsäule, dessen Dornfortsätze direct die Flossenstrahlen der Schwanzflosse tragen.
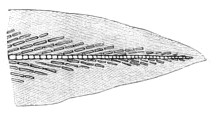
Fig. 648. Diphycerke Schwanzflosse von Protopterus.
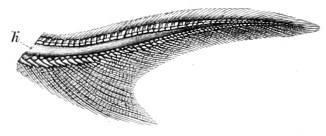
Fig. 649. Heterocerke Schwanzflosse von Acipenser sturio. k = ungegliederte Chordascheide.
1. Nur selten findet sich der ursprüngliche Zustand, indem die Wirbelsäule gerade verläuft bis an das Ende und oben und unten gleichmässig (symmetrisch) von der Schwanzflosse umsäumt wird (Fig. 648 — diphycerker Schwanz vieler Dipnoi und Crossopterygii).
2. Gewöhnlich krümmt sich der letzte Theil der Wirbelsäule aufwärts; unterhalb derselben wird die Schwanzflosse viel umfangreicher als oberhalb, und zwar so, dass der ganze Schwanz unsymmetrisch wird, indem er einen grossen oberen Lappen zeigt, den die Wirbelsäule nahezu bis zum Ende durchzieht, und einen kleineren unteren Lappen (Fig. 649 — heterocerker Schwanz der Selachii und Heterocerci). Soweit im Inneren die Wirbelsäule reicht, ebenso weit erstreckt sich auch aussen die Beschuppung (Fig. 689).
3. Endlich kann, vom heterocerken Schwanze ausgehend, der untere Schwanzlappen dem oberen, die Wirbelsäule enthaltenden an Grösse und Gestalt gleich werden, so dass wieder eine äusserlich symmetrische Schwanzflosse (Fig. 650, 651 — homocerker Schwanz der jüngeren Teleostomi) entsteht. Der aufwärts gekrümmte Theil der Wirbelsäule verkümmert dabei und setzt sich höchstens nur ein kurzes Stück weit in die Schwanzflosse fort; die Wirbelsäule endet in einem Knochen- oder Knorpelstab (u — Urostyl). Während dabei die oberen Dornfortsätze ganz verschwinden, werden die unteren überaus mächtig und tragen allein fast die ganze Schwanzflosse, die eigentlich nur noch aus dem ventralen Theile besteht. In den extremsten Fällen ist der aufwärts gekrümmte Theil der Wirbelsäule überhaupt nicht mehr nachzuweisen.
Zwischen diesen drei Hauptformen des Fischschwanzes finden sich alle Uebergänge. Innerlich heterocerk wird ein homocerker Schwanz genannt, bei dem der aufwärts gekrümmte Theil der Wirbelsäule noch deutlich ist (Fig. 650 u. 711). Als hemiheterocerker Schwanz (Fig. 644) wird eine Form bezeichnet, die die Charaktere des homocerken Schwanzes bereits zeigt, aber äusserlich noch etwas unsymmetrisch ist, indem besonders die Beschuppung in der oberen Hälfte des Schwanzes weiter reicht als in der unteren.
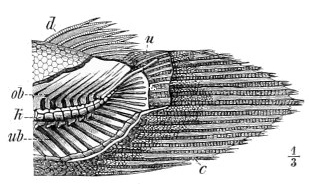
Fig. 650. Homocerke (innerlich heterocerke) Schwanzflosse von Amia calva.
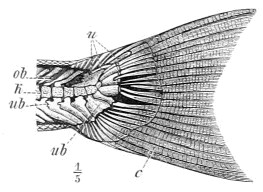
Fig. 651. Homocerke Schwanzflosse von Salmo salar.
c = gegliederte Flossenstrahlen der Schwanzflosse, d = der Rückenflosse; k = Wirbelkörper; ob = obere, ub = untere Dornfortsätze; u = Urostyl.
Sämmtliche paläozoische Fische haben diphycerken oder heterocerken Schwanz; hemiheterocerke Schwanzformen treten erst in der Secundärzeit auf; am spätesten erscheint die extrem homocerke Form. Die gleiche Reihenfolge durchläuft die ontogenetische Entwicklung des homocerken Schwanzes, der zuerst diphycerk ist, dann heterocerk und zum Schlusse erst homocerk wird.
Schädel der Fische.
Der Schädel besteht bei den niederen Fischen (Chondropterygii) nur aus dem knorpeligen Primordialcranium mit gleichfalls knorpeligen Kiefer- und Kiemenbögen (Fig. 653 u. 645); durch Verknöcherung der Knorpeltheile und Auftreten von zahlreichen Deckknochen, die zum Theil mit Knorpelknochen verwachsen, entsteht allmählich (vgl. p. 522) ein rein knöcherner Schädel, der für die höchst stehenden Formen charakteristisch ist. Sind Deckknochen vorhanden (Euichthyes), so findet sich stets ein knöcherner Kiemendeckel (Fig. 644 k) sowie ein Parasphenoid (Fig. 673 ps). Die äusseren Deckknochen sind bei den älteren gepanzerten Formen häufig noch mit Schmelz bedeckt, den die jüngeren Formen verlieren; auch sind die Deckknochen der ältesten Formen oft sehr stark skulptirt. Der Schädel ist meist unbeweglich mit der Wirbelsäule verbunden.
Hinter dem Zungenbeinbogen sind gewöhnlich 5 (3–7) Paar Kiemenbögen entwickelt, die ebenso wie der Zungenbeinbogen mit Reihen von Kiemenstrahlen besetzt sein können (Fig. 653 br u. k).
Es lassen sich sechs Ordnungen unter den Fischen annehmen, welche zwei natürliche Gruppen bilden:
A.Knorpelskelet, ohne Deckknochen; Schultergürtel nicht am Schädel befestigt; primäres Skelet der paarigen Flossen stets mächtig entwickelt (Fig. 645 u. 646 A); Zähne nur auf dem Unterkiefer und dem Palatoquadratum. Nur Placoidschuppen entwickelt. Bauchflosse des Männchens mit einem Begattungsapparat (Fig. 645 cop) endend.1. Unterklasse Chondropterygii.
a.Palatoquadratum und Hyomandibulare selbständig (Fig. 653); Zähne der Mundhöhle in zahlreichen regelmässigen Reihen; Kiemenspalten unbedeckt.
1.Obere Wirbelbögen und Rippen wohl entwickelt; Rückenflosse sehr lang mit zahlreichen stabförmigen Flossenträgern; paarige Flossen mit vielgliedriger Hauptachse (Fig. 645).1. Ordnung Proselachii (p. 541).
2.Obere Wirbelbögen und Rippen rückgebildet; Rückenflossen kurz mit wenigen, dicht gedrängten und vielfach verwachsenen Flossenträgern. Paarige Flossen mit wenigen grossen Basalplatten (Fig. 646 A).2. Ordnung Selachii (p. 541).
b.Palatoquadratum und Hyomandibulare verwachsen mit dem Cranium (autostyl). Wenige, aber mächtige Zähne vorhanden (Fig. 668). Kiemenspalten von einer Hautfalte bedeckt. Rückenflosse sehr lang mit zahlreichen Flossenträgern; paarige Flossen mit wenigen grossen Basalplatten.3. Ordnung Holocephali (p. 550).
B.B. Schädel und Schultergürtel mit Deckknochen versehen. Schultergürtel fast immer am Schädel befestigt. Meist Ganoid-, Cycloid- oder Ctenoidschuppen. Obere Wirbelbögen und Rippen meist wohl entwickelt; Rückenflosse mit stabförmigen Flossenträgern (Fig. 720). Kiemenspalten von einem knöchernen Kiemendeckel (Fig. 644 k) bedeckt. Kein Begattungsorgan an der Bauchflosse.2. Unterklasse Euichthyes.
a.Brustflossen gepanzert, ohne Seitenstrahlen (oder fehlend). Kopf und Vordertheil des Rumpfes gepanzert. Bauchflossen unbekannt (Fig. 669).? 4. Ordnung Placodermi (p. 551).
b.Brustflossen nicht gepanzert, mit Radien und Flossenstrahlen. Bauchflossen fast immer wohl entwickelt.
α.Palatoquadratum und Hyomandibulare verwachsen mit dem Cranium. Wenige grosse Zähne am Gaumen und Unterkiefer. Paarige Flossen mit vielgliedriger Hauptachse (Fig. 673 u. 674).5. Ordnung Dipnoi (p. 553).
β.Palatoquadratum und Hyomandibulare selbständig. Fast stets sind gegliederte und fächerförmig getheilte knöcherne Flossenstrahlen vorhanden (Fig. 644 u. 650).6. Ordnung Teleostomi (p. 556).
1. Unterklasse Chondropterygii.
Am Knorpelskelet der Chondropterygier zeigen sich oft, mitunter in ausgedehntem Maasse, Verkalkungen, nie aber treten Deckknochen auf.
1. Ordnung Proselachii (Ichthyotomi).
Fam. Pleuracanthidae.
Am besten bekannt ist die Gattung
Pleuracanthus Ag. (= Diplodus Ag., Orthacanthus Ag., Xenacanthus Beyr., Didymodus Cope, Fig. 645 u. 652).
Das ganze Skelet ist dermaassen mit körnchenartigen Verkalkungen erfüllt, dass es dadurch in hohem Grade fossilisationsfähig ist. Chordascheide ungegliedert, nicht verkalkt. Die dorsal verlängerten, mit breiter Basis versehenen oberen Wirbelbogenhälften (Fig. 645 o.b) bleiben vollständig getrennt. Die unteren Bögen bilden am Rumpfe paarige Platten (hc), die fadenförmige Rippen (r) tragen; am Schwanze verwachsen die Enden der unteren Bögen (ub) zu verlängerten Y-förmigen Dornfortsätzen.
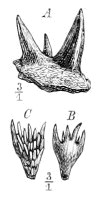
Fig. 652. Pleuracanthus Decheni Goldf. Rothliegendes. Lebach b. Saarbrücken. A dreispitziger Kieferzahn. B vielspitziger Schlundzahn von unten, C von oben gesehen.
Der Schädel ist ganz selachierartig, besitzt aber kein Rostrum, und der Mund ist endständig. Das Palatoquadratum (pq) ist Notidanus-artig, indem die hintere Hälfte eine hohe Platte bildet, die mit einem postorbitalen Fortsatz des Cranium in Gelenkverbindung steht; es trägt gleich dem Unterkiefer (nd) wie bei Selachii zahlreiche regelmässige Reihen von Zähnen (z); diese mit breiter Basalplatte versehenen Zähne (Fig. 652 A) besitzen eine sehr grosse Pulpahöhle und zeigen zwei lange äussere und eine kurze mittlere Spitze mit etwas gefurchter Oberfläche. Das am Cranium bewegliche Hyomandibulare (hm) und das Hyoideum (hy) tragen zahlreiche sehr lange Kiemen(haut)strahlen (k); dahinter sind sieben Paare von Kiemenbögen beobachtet, die kurze starre Kiemenstrahlen tragen. Vielspitzige kleine Zähnchen (Fig. 652 B, C) treten im Schlunde (sz) in dichten Haufen auf. Am Hinterende des Schädels findet sich ein langer, platter, gerader, zweizeilig gezähnter Nackenstachel (st).
Nicht weit hinter dem Nackenstachel beginnt die lange Rückenflosse (d), die etwa über der Schwanzmitte durch einen Einschnitt von der Schwanzflosse (c) getrennt ist; letztere ist diphycerk und endet in einer dünnen Spitze. Die zahlreichen, gleichlangen Flossenstrahlen (fs) der Rückenflosse werden von langen stabförmigen Flossenträgern (ft) getragen, deren unterstes Ende (ft’) fadenförmig und abgegliedert ist. Die Anzahl der Flossenträger entspricht der der oberen Wirbelbogenhälften. Vor der Schwanzflosse finden sich unmittelbar hinter einander zwei sehr kurze Afterflossen (an), deren Flossenträger von vorn nach hinten an Stärke zunehmen und direct den unteren Dornfortsätzen aufsitzen.
Der Schultergürtel (sg) besteht aus zwei ventral nicht vereinigten Spangen mit abgegliedertem unterem Ende (sg’). Ein Höcker trägt die Brustflossen; dieselben besitzen eine verlängerte vielgliederige Hauptachse (ax) mit zweizeilig angeordneten Radien (ss), die aber nur auf der ventralen (postaxialen) Seite auch an den proximalen Gliedern der Hauptachse auftreten; der erste postaxiale Radius (bs) scheint direct vom Schultergürtel zu entspringen.
Die an einem kleinen paarigen Becken (p) sitzenden Bauchflossen bestehen ebenfalls aus einer vielgliederigen [beim Männchen mit dem stachelähnlichen Begattungsorgan (cop) endenden] Hauptachse (ax’) mit wesentlich einzeilig (postaxial) angeordneten Radien (ss’); neben der Hauptachse entspringen direct vom Becken noch mehrere Nebenstrahlen (bs’). Mit Ausnahme der unmittelbar dem Becken aufsitzenden Theile tragen beim Männchen sämmtliche Elemente der Bauchflosse eine dichte periostale Knochenrinde.
Die paarigen Flossen sind wenigstens theilweise mit mosaikähnlichen Schüppchen (sch) bedeckt, der übrige Körper scheint im Gegensatze zu den Haien vollkommen nackt gewesen zu sein.
Zähne und Ichthyodoruliten von Pleuracanthiden finden sich im Carbon und Perm (? Keuper); vollständiger erhaltene Exemplare sind bisher nur aus dem Perm bekannt geworden und zwar besonders aus dem Rothliegenden von Lebach bei Saarbrücken, sodann aus Böhmen, Frankreich und Nordamerika.
P. (Xenacanthus) Decheni Goldf. (= P. Gaudryi Brongn.) waren gefrässige Raubfische von 30–80 cm Länge, in deren Magen sich nicht selten vollständige Archegosauren und Acanthodiden finden. Rothliegendes von Deutschland (bes. Saarbrücken, auch in Sachsen und Schlesien), von Böhmen (Braunau etc.) und in Frankreich (Kohle von Commmentry).
P. (Didymodus) platypternus Cope. Perm von Texas.
Unter allen bekannten Fischen, lebenden und fossilen, besitzt Pleuracanthus den primitivsten Bau, und es ist unter ihnen die Form, die den gemeinschaftlichen Vorfahren aller echten Fische noch am ähnlichsten sein dürfte. Der Schädel mit dem Visceralskelet ist durchaus der der Selachier, an die auch Zähne, Nackenstachel und männliches Begattungsorgan erinnern; würden die übrigen Theile des Skelets, nämlich Wirbelsäule und Gliedmassen allein bekannt sein, so könnten dieselben sehr wohl auf einen Crossopterygier oder Dipnoer bezogen werden.
Von Pleuracanthus-ähnlichen Formen sind die Selachii abzuleiten, indem Verkümmerung der oberen und unteren Wirbelbögen und der Rippen, Rückbildung der Dorsalflosse und ihrer Träger und umfangreiche Verwachsungen am Skelet der paarigen und unpaaren Flossen eintraten. (Die Gattung Cladodus (p. 546) ist jedenfalls eine Uebergangsform von den Proselachii zu den Selachii.) Andererseits könnten auf Proselachii auch die Teleostomi und Dipnoi zurückgeführt werden, wenn man annehmen will, dass sich Deckknochen ausbildeten und das männliche Begattungsorgan verloren ging.
2. Ordnung Selachii.
Die Wirbelsäule der Selachier (Plagiostomi oder Elasmobranchii) besitzt bei den älteren Formen noch eine ungegliederte Chordascheide. Erst seit dem Lias finden sich Formen mit biconcaven mehr oder weniger verkalkten Wirbelkörpern (Fig. 662 B). Bei der Verkalkung der Wirbel entstehen zunächst:
Cyclospondyli, bei denen der Querschnitt des Wirbels einen einfachen Kalkring zeigt; von diesen sind abzuleiten:
Tectospondyli mit mehreren concentrischen Ringen;
Asterospondyli mit radienförmigen Kalkstrahlen (Fig. 662 A u. C).
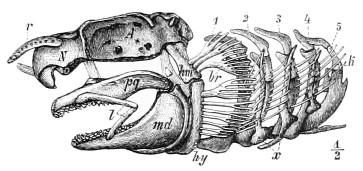
Fig. 653. Scyllium canicula Cuv. Lebend. Schädel und Visceralskelet von der Seite. N = Nasenregion, A = Augenregion, O = Ohrregion des Primordialcraniums. br = Kiemenstrahlen des Hyoidbogens (Kiemenhautstrahlen); hm = Hyomandibulare; hy = Hyoideum; k = Kiemenstrahlen der Kiemenbögen; l = Lippenknorpel; md = Mandibula; pq = Palatoquadratum; r = Rostrum; x = Ectobranchialia; 1–5 = erster bis fünfter Kiemenbogen.
Die oberen Wirbelbögen sind meist kümmerlich ausgebildet und umschliessen nur das Rückenmark, ohne sich dorsalwärts zu verlängern; ähnlich sind oft auch die unteren Bögen; Rippen sind meist rudimentär. Schädel und Visceralskelet zeigen ein ursprüngliches Verhalten (Fig. 653; s. p. 521); nur bei primitiveren Formen (Notidanidae etc.) articulirt das Palatoquadratum direct mit dem Cranium wie bei den Proselachii. An den grossen paarigen Flossen (Fig. 654) ist das primäre Flossenskelet (I) mächtig entwickelt; es zeigt mehrere, wohl durch Verwachsung entstandene, grosse Basalplatten (Pro-, Meso- und Metapterygium), welche, meist nur einseitig, zahlreiche Radien (r) tragen (präaxial an den Brust-, postaxial an den Bauchflossen). Diesen Radien sitzen die aus feinen Hornfäden bestehenden Flossenstrahlen (Fig. 654 fs) auf. Die sehr kurzen (1 oder 2) Rückenflossen und die Afterflosse werden von meist rudimentären, zusammengedrängten und oft zu Platten verschmolzenen Flossenträgern gestützt. Vor den Rücken- und Afterflossen stehen häufig kräftige Stacheln (Ichthyodoruliten). Der Schwanz ist diphycerk bis heterocerk. Die 5 (selten 6–7) Kiemenspalten sind unbedeckt. Der Körper trägt meist Placoidschuppen.
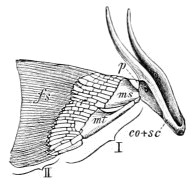
Fig. 654. Schultergürtel und Brustflosse von Heptanchus. co + sc = Schultergürtel; fs = Flossenstrahlen; ms = Mesopterygium; mt = Metapterygium; p = Propterygium; r = Radien; I = primäre, II = secundäre (aus Hornfäden bestehende) Flosse.
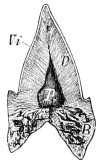
Fig. 655. Längsschnitt (schematisch) durch einen Selachierzahn mit eigentlichem Dentin (D) und einfacher Pulpahöhle (P); B = Wurzel; Vi = Vitrodentin.
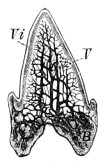
Fig. 656. Längsschnitt (schematisch) durch einen Selachierzahn mit typischem Vasodentin (V, mit weiten anastomosirenden Canälen). B = Wurzel; Vi = Vitrodentin.
Zähne stehen in meist zahlreichen, regelmässigen Reihen auf dem Palatoquadratum und Unterkiefer; es sind comprimirte, haken-, pfeilspitzen-, sägeähnliche, Fangzähne oft mit schneidenden Seitenrändern (Fig. 661 A–F, H, I), oder stumpfe Mahlzähne, die ein Zahnpflaster (Fig. 660) bilden; die innersten Zähne jeder Reihe sind die jüngsten, die äusseren die ältesten; indem die inneren Zähne allmählich nach aussen rücken, ersetzen sie die ausfallenden älteren, abgenutzten Zähne; die Wurzel, ursprünglich wie bei Placoidschuppen eine breite Basalplatte bildend, wird meist stark comprimirt und verlängert, einfach oder getheilt. Der feinere Bau der Zähne (ebenso der Placoidschuppen) ist sehr charakteristisch für die einzelnen Gattungen und Familien; er bleibt constant, während die äussere Gestalt der einzelnen Zähne je nach ihrer Stellung im Gebiss sehr verschieden sein kann. Häufig besteht der Zahn aus eigentlichem Dentin mit einfacher Pulpahöhle (Fig. 655) oder aber aus Vasodentin mit weiten Canälen statt oder neben der einfachen Pulpahöhle; das Vasodentin kann grobe, vielfach mit einander anastomosirende Canäle zeigen (Fig. 656); oder es findet sich nur ein baumförmig verzweigter Canal (Fig. 657); oder (bei Mahlzähnen) es lassen sich zahlreiche, wenig verzweigte, ungefähr parallel verlaufende, nicht anastomosirende Canäle (Fig. 658) erkennen.
Die Selachier sind beinahe ausschliesslich Meeresbewohner; ihre Reste, meist nur einzelne Zähne, Ichthyodoruliten und Wirbel, selten vollständigere Exemplare, liegen fast in allen marinen Ablagerungen, manchmal in ausserordentlicher Menge. Schon im obersten Silur und im Devon finden sich Zähne und Ichthyodoruliten (Onchus), die zu Selachii gehören können. Unzweifelhafte Selachii erscheinen erst im Carbon; noch in der Gegenwart spielen sie eine nicht unbedeutende Rolle. Die zahlreichen Familien werden auf die beiden Unterordnungen der Squaloidei und Batoidei vertheilt, die sich allerdings fossil schwer trennen lassen.
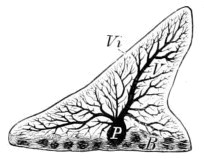
Fig. 657. Längsschnitt durch eine Placoidschuppe von Scymnus lichia. B = Basalplatte; V = Vasodentin mit baumförmig verästelten Canälen und kleiner Pulpahöhle (P); Vi = Vitrodentin.
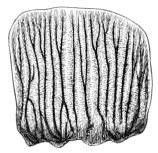
Fig. 658. Längsschnitt (schematisch) durch einen polsterförmigen Mahlzahn eines Selachiers. Vasodentin mit ungefähr parallel laufenden Canälen.
1. Unterordnung Squaloidei oder Haie.
Körper meist cylindrisch, Brustflossen frei; Kiemenspalten seitlich.
1. Fam. Hybodontidae.
Rückenstacheln (Fig. 659) vorhanden (wenigstens bei der Gattung Sphenacanthus finden sich zwei Rückenflossen, jede mit einem Stachel); Zähne (Fig. 661 F) mehrspitzig, die Spitzen der Länge nach gestreift oder gefältelt, die Mittelspitze ist am höchsten. Zähne aus Vasodentin mit anastomosirenden Canälen (Fig. 656) gebildet. Carbon (Devon) bis Kreide.
Diese Familie ist nicht scharf von der folgenden, den Cestraciontidae, zu trennen; auch die Notidanidae und Lamnidae dürften auf sie zurückgeführt werden.
Cladodus Ag. Zähne mit verbreiterter halbkreisförmiger Basis, mit mehreren langen, scharfen Spitzen, unter denen die seitlichen grösser sind als die der Mittelspitze benachbarten. (Devon) und Steinkohlenformation.
C. striatus Ag. Kohlenkalk von Irland.
Cladodus ist vielleicht besser zu den Proselachii zu stellen, da wie bei diesen die Brustflosse eine vielgliederige Hauptachse besitzt im Gegensatze zu allen anderen Selachii. Auch die plattenförmige Zahnbasis und die getrennt bleibenden Hälften des Schultergürtels weisen dahin.
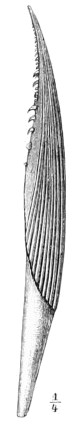
Fig. 659. Hybodus reticulatus Ag. Rückenflossenstachel (Ichthyodorulit). Oberer Lias (ε). Ohmden in Württemberg.
Hybodus Ag. (Fig. 659, 661 F). Zähne mit hoher Mittelspitze und nach aussen kleiner werdenden Nebenspitzen; Wurzel comprimirt. Die grossen gefurchten Rückenstacheln tragen am Hinterrande zwei Reihen von Dornen. Zwei grosse hakenförmige Stacheln hinter der Orbita. Chordascheide ungegliedert. Trias (Carbon?) bis Kreide.
H. plicatilis Ag. Häufig im deutschen Muschelkalk.
H. reticulatus Ag. (Fig. 659 u. 661 F). Lias von Württemberg und England.
2. Fam. Cestraciontidae.
Zwei Rückenflossen, jede mit einem Stachel. Vordere Zähne klein und meist spitz, die hinteren verlängert und stumpf, ein zusammenhängendes Pflaster (Fig. 660) bildend. Zähne aus Vasodentin mit weiten Canälen bestehend. Carbon bis Gegenwart.
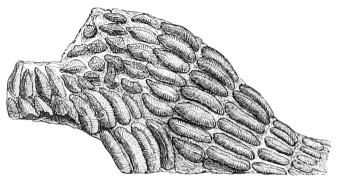
Fig. 660. Acrodus nobilis Ag. Zahnpflaster des rechten Unterkiefers. Unterer Lias von Lyme Regis.
Acrodus Ag. (Fig. 660 u. 661 G). Zähne mit verästelten Rippen, die nach beiden Seiten von einer Längskante ausgehen. Trias bis Kreide.
A. Gaillardoti Ag. Muschelkalk.
A. nobilis Ag. (Fig. 660, 661 G). Unterer Lias von Lyme Regis und Württemberg.
Cestracion Cuv. Oberfläche der Pflasterzähne fein netzförmig mit undeutlicher Längskante. Jura bis Gegenwart.
C. falcifer Wagn. Oberer Malm von Solnhofen.
3. Fam. Notidanidae.
Eine Rückenflosse ohne Stachel; 6–7 Kiemenspalten. Zähne sägeförmig (Fig. 661 D) mit tiefen Zacken, die von vorn nach hinten an Grösse abnehmen, aus Vasodentin mit anastomosirenden Canälen bestehend. Chordascheide undeutlich gegliedert.
Fig. 661. Haifischzähne. A, B Carcharodon megalodon Ag. Miocän von Malta. C Galeocerdo aduncus Ag. Miocän von Baden. D Notidanus serratus Fraas. Ob. Malm von Nusplingen. E Oxyrhina hastalis Ag. Miocän von Ungarn. F Hybodus reticulatus Ag. Unterer Lias von England. G Acrodus nobilis Ag. Lias von Württemberg. H, I Lamna contortidens Ag. Miocän von Süldorf.
Notidanus Cuv. (Fig. 661 D) (= Hexanchus et Heptanchus Rafin.). Nicht selten vom Jura bis zur Gegenwart.
N. Münsteri Ag. Oberer Malm von Bayern und Württemberg.
N. serratus Fraas (Fig. 661 D). Oberer Malm von Nusplingen (Württemberg).
4. Fam. Lamnidae.
Zwei Rückenflossen ohne Stacheln. Grosse spitze platte Zähne von ungefähr dreieckiger Gestalt mit comprimirter Wurzel (Fig. 661 A, B); die beiden scharfen Seitenränder sind öfters gezähnelt und an der Basis mit Nebenzacken (Fig. 661 H) versehen. Zähne aus Vasodentin mit anastomosirenden Canälen (Fig. 656) bestehend. Wirbelkörper meist mit 8 radialen gegabelten Kalkstrahlen auf dem Querschnitt (Fig. 662 A — asterospondyl). Recent und fossil seit dem Jura.
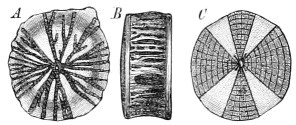
Fig. 662. Asterospondyle Haifischwirbel. A Querschnitt eines Otodus-Wirbels aus dem Oligocän von Flonheim. B seitliche Ansicht eines Otodus-Wirbels aus dem Londonthon von Sheppy. C Querschnitt eines Wirbels von Galeocerdo aus dem Miocän von Baltringen.
Oxyrhina Ag. (Fig. 661 E). Zähne schmal, zungenförmig, ohne Nebenzacken. Recent und fossil vom Jura an.
O. Mantelli Ag. Kreide von Europa und Nordamerika.
O. hastalis Ag. (Fig. 661 E). Eocän von Nordamerika; jüngeres Tertiär von Europa.
Lamna Cuv. (Fig. 661 H, I). Zähne schlank mit glatten Seitenrändern und mit Nebenspitzen. Kreide bis Gegenwart.
L. contortidens Ag. (Fig. 661 H, I). Miocän von Europa.
Otodus Ag. (Fig. 662 A, B). Zähne ähnlich, nur breiter. Sehr häufig in der Kreide und im Tertiär.
O. obliquus Ag. Eocän von Europa.
O. appendiculatus Ag. Obere Kreide von Europa, New Jersey und Queensland.
Carcharodon Smith (Fig. 661 A, B). Zähne sehr gross und breit mit gezähnelten Seitenrändern. Tertiär und lebend.
C. megalodon Ag. (Fig. 661 A, B). Von gewaltiger Grösse. Im Eocän und jüngeren Tertiär fast kosmopolitisch (Malta, Alabama etc.).
5. Fam. Carchariidae.
Aehnlich den Lamnidae, aber die Zähne aus eigentlichem Dentin (Fig. 655) mit grosser einfacher Pulpahöhle bestehend. Die Wirbelkörper zeigen vier mit der Spitze nach innen gerichtete verkalkte Keile auf dem Querschnitt (Fig. 662 C). Kreide bis Gegenwart.
Galeocerdo Müll. u. Henle (Fig. 661 C u. 662 C). Vorderrand der Zähne convex, Hinterrand concav, an der Basis stark gezackt. Kreide bis Gegenwart.
G. aduncus Ag. (Fig. 661 C). Tertiär von Europa und Nordamerika.
Carcharias Cuv. Zähne dreieckig ohne Nebenspitzen, im Ober- und Unterkiefer verschieden. Kreide bis Gegenwart. Hierher gehören sehr zahlreiche lebende Arten.
C. speciosus Probst. Miocän von Baltringen.
6. Fam. Squatinidae.
Körper rochenähnlich, breit und abgeplattet; doch ist die grosse Brustflosse vom Kopfe getrennt und die Kiemenspalten seitlich. Zwei Rückenflossen ohne Stacheln auf dem Schwanze. Zähne spitz, kegelförmig, ohne Nebenzacken. Wirbel tectospondyl (mit mehreren concentrischen Kalkringen auf dem Querschnitt). Die einzige Gattung
Squatina Bell. existirte vom Jura an und findet sich noch lebend fast in allen Meeren.
S. alifera Mnstr. ist in einer Anzahl vortrefflich erhaltener Skelete bekannt, die aus den Plattenkalken des oberen Malm von Bayern (Solnhofen, Eichstätt), von Württemberg (Nusplingen) und von Cirin (Dép. Ain) stammen.
2. Unterordnung Batoidei oder Rochen.
Körper platt (deprimirt); Brustflosse sehr gross, mit dem Kopfe verwachsen; 5 Kiemenspalten auf der Bauchseite. Wirbelkörper cyclospondyl und tectospondyl (mit Kalkringen auf dem Querschnitte).
Fam. Myliobatidae.
Brustflossen sehr verbreitert; Schwanz peitschenförmig mit einem Stachel; grosse platte Mahlzähne bilden ein mosaikartiges Pflaster (Fig. 663); Haut nackt. Zähne aus Vasodentin mit ungefähr parallel laufenden Canälen bestehend Fig. 664). Tertiär und lebend.
Myliobatis Cuv. (Fig. 663). Mit mehreren Reihen sechseckiger Zahnplatten, von denen bei erwachsenen Exemplaren die mittleren ausserordentlich breit werden. Je nach dem Alter des Individuums, sowie je nach der grösseren oder geringeren Abkauung oder Abrollung bieten die Zähne ein ausserordentlich verschiedenes Aussehen bei derselben Art. Eocän bis Gegenwart.
M. toliapicus Ag. (Fig. 663). Eocän von England und Belgien.
Fig. 663. Myliobatis toliapicus Ag. Londonthon von Sheppy. Zahnpflaster.
Fig. 664. Längsschnitt (schematisch) durch einen polsterförmigen Mahlzahn eines Selachiers. Vasodentin mit ungefähr parallel laufenden Canälen.
Fig. 665. Ptychodus latissimus Ag. Zahn von der Seite. Obere Kreide (Senon) von England.
Unter den fossilen Formen mit pflasterartigen Zähnen, die den Rochen anzureihen sind, sind ferner die folgenden Gattungen hervorzuheben, deren jede vielleicht den Typus einer besonderen Familie bildet; die Zähne fast all dieser Formen besitzen Vasodentin, das zahlreiche, ungefähr parallele und nicht mit einander anastomosirende Canäle zeigt (Fig. 664).
Psammodus Ag. Zähne gross, etwa rechteckig; Oberfläche eben, porös, punktirt, mehr oder weniger fein runzelig. Kohlenkalk von Europa und Nordamerika.
P. porosus Ag. Kohlenkalk von Grossbritannien, Belgien, Russland.
Strophodus Ag. Zähne gross, verlängert, etwa rechteckig; Oberfläche fast eben, mit netzförmig verästelten Linien, zwischen denen feine Poren zerstreut sind. Jura und Kreide.
S. reticulatus Ag. Dogger von Mitteleuropa.
Ptychodus Ag. (Fig. 665), eine sehr charakteristische Selachierform der mittleren und oberen Kreide, deren Rochennatur erst neuerdings nachgewiesen wurde. Die grossen Zähne sind polsterförmig, fast quadratisch; die schmelzglänzende Oberfläche zeigt tiefe Querfalten und ist auf den Seiten gekörnelt.
P. latissimus Ag. (Fig. 665). Obere Kreide von Deutschland, Böhmen, England, Russland.
Janassa Mnst. Zähne von vorn nach hinten stark comprimirt, plattenförmig, aus einer langen Wurzel und stark nach rückwärts gebogenen stumpfen Krone bestehend, mit einander ein dichtes Pflaster bildend. Carbon und Perm.
J. bituminosa Schloth. Perm von Deutschland (Kupferschiefer) und England.
Cochliodus Ag. (Fig. 666). In jedem Unterkieferaste finden sich zwei aus Einzelzähnen verwachsene Zahnplatten; die hinterste und grösste derselben ist schraubenförmig gefurcht, die ganze Oberfläche der Zahnplatte fein punktirt. Carbon.
C. contortus Ag. (Fig. 666). Kohlenkalk von Irland.
Fig. 666. Cochliodus contortus Ag. Unterkiefer mit Zähnen. Kohlenkalk von Irland.
Fig. 667. Auffallend grosse Placoidschuppe mit Stachel von Raja.
Fam. Rajidae.
Körper rhombisch, auf der Oberseite mit Placoidschuppen besetzt, von denen oft einige sehr gross und mit einem hakenförmigen Stachel versehen sind (Fig. 667). Schwanz ohne langen Stachel. Gebiss mit zahlreichen, kleinen, spitzen Zähnchen. Tertiär und recent. Wichtigste Gattung:
Raja Cuv. (Fig. 667). Eocän bis Gegenwart.
R. antiqua Ag. Pliocän von England und Italien.
3. Ordnung Holocephali (Chimären oder Seekatzen).
Knorpelskelet; die ungegliederte Chordascheide enthält verkalkte Ringe, die viel zahlreicher sind als die Körpersegmente. Palatoquadratum und Hyomandibulare mit dem Primordialcranium verschmolzen. Vier Kiemenspalten von einer Hautfalte bedeckt. Gaumen jederseits mit zwei (Fig. 668 a u. b), Unterkiefer mit einem (c) mächtigen schneidenden Zahn versehen. Ein grosser Nackenstachel hinter dem Kopfe, gelenkig verbunden mit einem breiten Flossenträger; dahinter eine lange bis zum Schwanze verlaufende niedere Rückenflosse, von zahlreichen, stabförmigen Flossenträgern gestützt. Die grossen paarigen Flossen sind denen der Selachii ähnlich. Die Flossenstrahlen bestehen aus sehr zahlreichen dicht stehenden Hornfäden. Die Haut ist nackt oder trägt kleine Placoidschüppchen.
Fig. 668. Ischyodus avita H. v. Meyer. Oberer Jura. Eichstätt. Gebiss. a = vorderer, b = hinterer Oberzahn; c = Unterkieferzahn.
Die in der Gegenwart noch spärlich vertretene Ordnung existirte vielleicht schon im Devon. Unzweifelhafte Chimären finden sich aber erst seit dem Jura; aus dem lithographischen Schiefer von Eichstätt sind vollständige Skelete bekannt. Einzige
Fam. Chimaeridae.
Ischyodus Egerton. (Devon), Jura, Kreide und Tertiär.
I. avita H. v. Meyer (Fig. 668). Oberer Malm von Eichstätt.
2. Unterklasse Euichthyes.
4. Ordnung Placodermi (nebst Cephalaspidae und Pteraspidae).
Die Chordascheide ist nicht verknöchert. Kopf und vorderer Theil des Rumpfes sind mit meist sternförmig verzierten grossen, aber dünnen Knochenplatten vollkommen gepanzert (Fig. 669). Der Kopfpanzer (K) ist mit dem Rumpfpanzer (B) gelenkig verbunden. Die beiden mächtigen, äusserlich gepanzerten Ruderorgane (Brustflossen — R) bestehen aus zwei gegen einander beweglichen Hälften; sie sind nicht bei allen Formen nachgewiesen; Radien und Flossenstrahlen sind nicht daran bekannt. Bauchflossen sind ebenfalls unbekannt.
Fig. 669. Asterolepis ornatus Pander. Von der Seite, restaurirt. Old red Sandstone. Livland. K = Kopfpanzer; B = Rumpfpanzer; R = Ruderorgan; O = Orbitalöffnung (?).
Zu den Placodermi gehören eine Anzahl Fische von seltsamer Körpergestalt, deren Beziehungen zu anderen Fischgruppen wie auch zu einander noch sehr dunkel sind. Sie sind fast vollständig auf das Devon beschränkt und gehören zu den bezeichnendsten Thierformen des Old red Sandstone; besonders häufig sind ihre Reste in Schottland; Nordamerika hat prachtvoll erhaltene Stücke geliefert; sie finden sich auch in Russland, seltener in Deutschland.
1. Fam. Asterolepidae.
Inneres Skelet nicht erhaltungsfähig.
Pterichthys Ag. (Fig. 670). Das Kopfschild (K) zeigt eine querstehende, von kleinen Platten bedeckte Oeffnung (O), die vielleicht als Orbitalöffnung anzusehen ist. Der Kopf zeigt Spuren von Schleimkanälen. Die hintere Körperhälfte ist von Schuppen bedeckt und trägt eine kleine Rückenflosse (F). Die medianen Schuppen sind vor der Rückenflosse als grössere Platten ausgebildet, hinter der Rückenflosse sind sie fulkrenähnlich (f). Devon. Die zahlreichsten und vollständigsten Exemplare stammen aus dem Old red Sandstone von Schottland.
P. cornutus Ag. (Fig. 670). Old red Sandstone von Schottland.
Fig. 670. Pterichthys cornutus Ag., restaurirt. Old red Sandstone von Schottland. A Rückenansicht. B Schwanz von der Seite. F = Rückenflosse; K = Kopf; O = unpaare Oeffnung (Orbitalöffnung); R = Ruderorgan; f = fulkrenähnliche Medianschuppen; hl = hintere Dorsolateralplatte; hm = hintere dorsale Medianplatte; vl = vordere Dorsolateralplatte; vm = vordere dorsale Medianplatte.
Asterolepis Eichw. (Fig. 669) ist Pterichthys ähnlich. Devon.
A. ornatus Eichw. (Fig. 669). Old red Sandstone von Livland.
Bothriolepis Eichw. ist der Gattung Pterichthys ähnlich, aber die hintere Körperhälfte ist schuppenlos und daher nie beobachtet, obwohl zu dieser Gattung die best erhaltenen der bekannten Placodermen gehören. Devon von Europa und Canada.
B. canadensis Whiteaves. Das Oberdevon von Scanmenac-Bay in Canada hat zahlreiche, vortrefflich erhaltene Exemplare dieser Art geliefert.
B. Panderi Lahusen. Devon von Russland.
2. Fam. Coccosteidae.
Inneres Skelet theilweise fossil erhaltungsfähig.
Coccosteus Ag. (Fig. 671). Obere und untere Wirbelbögen, Flossenträger, sowie ein Theil des Innenschädels ist verknöchert. Die Kiefer tragen winzige Zähnchen (Fig. 671); Augen seitlich, von einander getrennt. Ein Ruderorgan ist unbekannt. Hintere Körperhälfte schuppenlos. Devon von Deutschland, Schottland, Livland und Nordamerika.
C. decipiens Ag. Aus dem Old red Sandstone von Schottland und Livland.
Fig. 671. Coccosteus decipiens Ag. Kiefer mit Zähnchen. Old red Sandstone. Livland.
Dinichthys Newberry. Fische von gewaltiger Grösse, deren Kopf bis 3 Fuss lang und fast ebenso breit wird; sie finden sich besonders im Devon von Nordamerika.
D. Hertzeri Newb. Devon von Delaware, Ohio.
Anhang: Fam. Cephalaspidae.
Wirbelsäule nicht verknöchert, Kopf mit einem einfachen grossen Knochenschilde bedeckt, in welchem die Augenhöhlen nahe beieinander liegen. Rumpf von rhombischen Schuppen bedeckt. Schwanz heterocerk. Paarige Gliedmassen unbekannt. So lange die hierher gehörigen Formen nicht besser bekannt sind als bisher, ist es nicht möglich, ihnen eine sichere Stellung im System anzuweisen. Sie gehören zu den ältesten Fischen und finden sich nur im obersten Silur und Devon.
Fig. 672. Cephalaspis Lyelli Ag. Old red Sandstone von Schottland. Restaurirt.
Cephalaspis Ag. Silur und Devon.
C. Lyelli Ag. ist nicht selten im Old red Sandstone von Schottland.
Schliesslich möge hier auch die räthselhafte
Fam. Pteraspidae
Platz finden, seltsame Formen aus dem obersten Silur und Devon, von denen nur gewölbte Panzer bekannt sind, die als Rücken- und Bauchschild den Kopf und Vorderrumpf fischähnlicher Formen bedeckt haben sollen; das Rückenschild ist meist zusammengesetzt (Gattung Pteraspis Cuv.), das Bauchschild einfach (Gattung Scaphaspis Lank.). Kleine Augenöffnungen liegen am Aussenrand des Rückenschildes.
5. Ordnung Dipnoi.
Das Innenskelet der Dipnoi zeigt nur geringe Verknöcherung; die Chordascheide bleibt ungegliedert. Am Kopfe treten Deckknochen auf, vor allem ein Parasphenoid (Fig. 673 ps) und ein Operculum, ebenso am Schultergürtel. Das Palatoquadratum sowie das rudimentäre Hyomandibulare sind mit dem Schädel verwachsen. Der Gaumen (pp) und der Unterkiefer trägt jederseits eine sehr grosse kammförmige Zahnplatte (Fig. 673 d u. Fig. 675). Sind die paarigen Flossen wohl entwickelt, so sind sie quastenförmig mit langer vielgliedriger, äusserlich beschuppter Hauptachse und zweizeilig angeordneten Seitenstrahlen (Fig. 674 p u. v, ähnlich Pleuracanthus, vgl. Fig. 645), sonst peitschenförmig ohne Seitenstrahlen. Die Schwanzflosse ist diphycerk (Fig. 648, 674) oder heterocerk (Fig. 676). Die unpaaren Flossen werden von stabförmigen Flossenträgern getragen, die direkt den Dornfortsätzen aufsitzen. Die Flossenstrahlen bestehen meist aus Hornfäden (Fig. 674), manchmal aus gegliederten Strahlen (Fig. 676). Der Körper ist mit grossen rundlichen Schuppen bedeckt. Rippen lang und kräftig.
Fig. 673. Dipterus Valenciennesi Ag. Old red Sandstone von Schottland. A Unterseite des Schädels. B Unterkiefer von oben. a = Unterkiefergelenk; d = Zahnplatten; pp = Palatinum; ps = Parasphenoid.
Die lebenden Dipnoi besitzen neben ihren Kiemen auch Lungen; sie finden sich in Südamerika, Afrika (Protopterus — Fig. 648) und Australien und leben daselbst in schlammigen, dem Austrocknen oft unterworfenen Gewässern. Fossil kommen sie vom Devon (Silur?) an vor.
Dipnoi sind offenbar innig mit den Crossopterygii, den primitivsten Teleostomi verwandt. Die Abgrenzung der paläozoischen Vertreter beider Gruppen ist sehr unsicher.
1. Unterordnung Sirenoidea.
Die lange einfache Rückenflosse geht ohne Unterbrechung in die diphycerke Schwanzflosse über (Fig. 674). Flossenstrahlen aus Hornfäden bestehend. Rumpf von dünnen Cycloidschuppen bedeckt. Keine Jugularplatten zwischen den Unterkieferästen. Deckknochen des Kopfes nicht sehr zahlreich. Paläozoisch, mesozoisch und recent.
1. Fam. Phaneropleuridae.
Paarige Flossen wohl entwickelt, quastenförmig. Kurze conische Kieferzähne sind vorhanden. Gaumenzähne dreieckig, mit Reihen von Zacken versehen. Devon und Carbon.
Phaneropleuron Huxl. (Fig. 674). Devon von Schottland und Canada.
Ph. Andersoni Huxl. (Fig. 674). Old red Sandstone von Schottland.
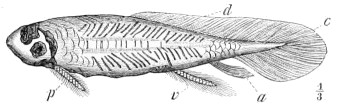
Fig. 674. Phaneropleuron Andersoni Huxl. Old red Sandstone von Dura Den in Schottland. a = Afterflosse; c = Schwanzflosse; d = Rückenflosse; p = Brustflosse; v = Bauchflosse.
Fig. 675. Ceratodus runcinatus Plien. Lettenkohlensandstein von Hoheneck bei Ludwigsburg. Obere Zahnplatte.
2. Fam. Ceratodontidae.
Keine conischen Kieferzähne. Gaumenzähne dreieckig. Paarige Flossen wohl entwickelt, quastenförmig.
Ceratodus Ag. (Fig. 675). Zahnplatten mit unten 4, oben 5 (6) hohen einfachen Kämmen. Findet sich fossil weit verbreitet, besonders in der Trias, auch im Jura, sowie lebend in Australien.
C. Kaupi Ag. und C. runcinatus Plien. (Fig. 675). Lettenkohlensandstein von Württemberg.
C. Forsteri Krefft. Zahnplatten mit 6 Kämmen. Lebend in Australien.
Ctenodus Ag. scheint Ceratodus sehr ähnlich zu sein; Zahnplatten meist mit mehr als 5 mehr oder weniger gezackten Kämmen. Carbon und Perm.
2. Unterordnung Ctenodipterini.
Zwei kurze Rückenflossen getrennt von der heterocerken Schwanzflosse (Fig. 676). Flossenstrahlen gegliedert. Runde auf der Oberfläche gekörnelte Ganoidschuppen. Paläozoisch.
Fam. Dipteridae.
Schädeldach mit zahlreichen kleinen schuppenförmigen Hautschildern. Paarige Flossen wohl entwickelt, quastenförmig (Fig. 676).
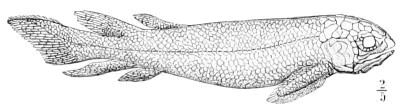
Fig. 676. Dipterus Valenciennesi Ag. Restaurirt. Old red Sandstone von Schottland.
Dipterus Sedgw. u. Murch. (Fig. 673, 676). Zahnplatten mit fächerförmig von der inneren Ecke aus verlaufenden gezackten Kämmen. Zwei Paar Jugularplatten (s. p. 556) zwischen den Unterkieferästen. Devon.
D. Valenciennesi Ag. (Fig. 673, 676). Old red Sandstone von Schottland.
6. Ordnung Teleostomi.
Zu dieser Ordnung gehört die grosse Mehrzahl der lebenden wie der fossil bekannten Fische. Teleostomi finden sich schon im Devon in grosser Mannigfaltigkeit. In vielen Punkten ihrer Organisation lässt sich eine allmählich fortschreitende Entwicklung von den ältesten und primitivsten Formen bis zu den jüngsten und höchststehenden erkennen.
Die anfangs knorpelige Wirbelsäule (mit wohlerhaltener Chorda und noch ungegliederter Chordascheide wie bei Accipenser) geht durch eine grosse Anzahl von Zwischenstufen (vgl. p. 517) allmählich in den vollkommen verknöcherten Zustand über, und zwar zeigen diesen Zustand die höchsten Formen aus ganz verschiedenen Gruppen der Teleostomi, die ihn unabhängig von einander erreicht haben (Polypterus unter den Crossopterygii, Lepidosteus unter den Euganoidei, viele Physostomi und alle Physoclysti).
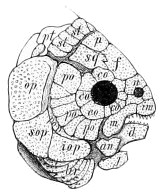
Fig. 677. Kopf von Dapedius aus dem Lias. an = Angulare; br = Kiemenhautstrahlen; co = Circumorbitalia; d = Dentale; f = Frontale; im = Intermaxillare; iop = Interoperculum; j = Jugularplatte; m = Maxillare; n = Nasale; op = Operculum; p = Parietale; po = Postorbitalia; pop = Praeoperculum; pt = Posttemporale; sop = Suboperculum; sg = Squamosum; st = Supratemporalia.
Das Primordialcranium nebst dem Visceralskelet ist ebenfalls ursprünglich noch ganz knorpelig, doch stets von einer mehr oder minder grossen Zahl von Deckknochen umgeben, die bei vielen älteren Formen einen äusseren, fast vollständig geschlossenen Kopfpanzer (Fig. 677, 683) darstellen. Erst bei den höchststehenden Teleostomi findet sich das Primordialcranium grösstentheils verknöchert, z. Th. unter inniger Verwachsung mit Deckknochen, und eine geschlossene Knochenkapsel um das Gehirn bildend; ein äusserer geschlossener Kopfpanzer ist bei solchen Formen nur selten noch ausgebildet.
Auch das Visceralskelet verknöchert bei den höheren Teleostomi oder es wird, wie ein Theil des Palatoquadratum und des Unterkiefers, durch Deckknochen ersetzt. Das Hyomandibulare, dessen unterer Theil (als Symplecticum) vom oberen abgegliedert ist, trägt den Unterkiefer.
Unter den Deckknochen des Schädels (Fig. 677) ist neben anderen (vgl. p. 523) besonders der am Hyomandibulare befestigte und bewegliche Kiemendeckel hervorzuheben, der aus dem Praeoperculum (pop) und Operculum (op) besteht, zu denen noch ein Suboperculum (sop) und Interoperculum (iop) treten kann. Das Zungenbein trügt fast immer verlängerte knöcherne Seitenstrahlen, die Kiemenhautstrahlen (Branchiostegalia Fig. 677 br); fehlen diese, so finden sich zwischen den Unterkieferästen die Kehl- oder Jugularplatten (Fig. 677, 684 j), die selten auch neben Kiemenhautstrahlen vorhanden sind. Die Opercularplatten selbst sind nur als die umgewandelten Kiemenstrahlen des Hyomandibulare anzusehen.
Zähne können in der mannigfaltigsten Ausbildung auf allen den Mund oder Schlund begrenzenden Knochen auftreten.
Der Schultergürtel (Fig. 678 B, C) der Teleostomi besteht zum grösseren Theil aus Deckknochen [Secundärer Schultergürtel mit Clavicula (cl), Supraclavicula (scl), oft auch Postclavicula (pcl) und Infraclavicula], und ist meist durch ein besonderes Posttemporale (pt) mit dem Schädel verbunden (vgl. Fig. 688); nur bei rudimentärer Brustflosse kann eine Verbindung mit dem Schädel unterbleiben (Anguilliformes). Der primäre Schultergürtel bleibt bei den niederen Formen knorpelig und verknöchert bei den höheren zu zwei getrennten Stücken, dem Scapulare (sc) und Coracoideum (co); er tritt aber gegen den secundären Schultergürtel sehr zurück.
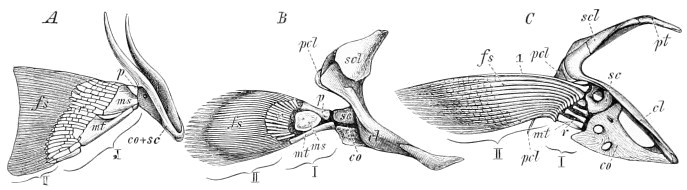
Fig. 678. Schultergürtel und Brustflosse von A Heptanchus (Selachier), B Polypterus (Crossopterygier mit quastenartiger Brustflosse) und C Salmo lacustris (Physostome mit fächerartiger Brustflosse).
Primärer Schultergürtel: co = Coracoid; sc = Scapulare.
Secundärer Schultergürtel: cl = Clavicula; pcl = Postclavicula; scl = Supraclavicula; pt = Posttemporale, zur Befestigung am Schädel.
Primäres Flossenskelet (= I): p = Propterygium; ms = Mesopterygium; mt = Metapterygium; r = Radien.
Secundäres Flossenskelet (= II): fs = Flossenstrahlen; 1 = erster Flossenstrahl.
Das kleine Becken ist bei den höheren Formen verknöchert und wahrscheinlich mit einem Theil des primären Bauchflossenskelets verwachsen; es rückt bei vielen Physoclysti aus seiner ursprünglich bauchständigen Lage weit nach vorn an die Brust (Fig. 719 v) oder selbst an die Kehle, wobei es sich mit dem Schultergürtel in Verbindung setzen kann.
Die äusseren paarigen Flossen besitzen bei den niederen Teleostomi (Fig. 678 B) noch ein wohlentwickeltes, mit zahlreichen Radien (r) versehenes primäres Flossenskelet (I), das die Flossenstrahlen (fs) trägt [quastenförmige Flosse mit langer (Fig. 680) oder kurzer (Fig. 678 B) Achse bei den Crossopterygii]; bei den höheren Teleostomi (Fig. 678 C) wird das primäre Flossenskelet (I) aber zu Gunsten des secundären (II), aus den Flossenstrahlen (fs) bestehenden, immer mehr zurückgebildet, bis letzteres fast allein die ganze Flosse zusammensetzt (fächerförmige Flosse); wenigstens ein Flossenstrahl (1) articulirt dann direkt mit dem Gliedmassengürtel; als Rest des primären Skelets (Fig. 678 C I) finden sich bei den höheren Formen am Schultergürtel nur noch wenige, höchstens 5 Knochenstücke (mt und r), die alle direkt an den Schultergürtel stossen; an der Bauchflosse dagegen gehen auch diese zuletzt verloren, so dass hier alle Flossenstrahlen sich direkt an das Becken anlegen können.
Die ältesten Teleostomi sind alle diphycerk (Fig. 680) oder heterocerk (Fig. 689); erst seit der Trias tritt die hemiheterocerke (Fig. 699) Schwanzform auf, und die känozoischen Formen sind fast durchweg homocerk (Fig. 708, 712).
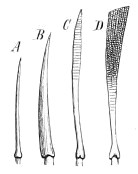
Fig. 679. Flossenstrahlen. A, B Stachelstrahlen; ungegliedert, hart. C weicher Flossenstrahl; gegliedert, einfach. D ebenso; gegliedert und fächerförmig.
Die paarigen und unpaaren Flossen der Teleostomi zeigen stets gegliederte und meist auch fächerförmig getheilte Flossenstrahlen (Fig. 679 C, D); nur bei den höchsten Formen (Physoclysti) können dieselben durch ungegliederte Stachelstrahlen (Fig. 679 A, B) in grösserer Anzahl ersetzt werden (Fig. 719, 720). Die unpaaren Flossen stützen sich auf stabförmige Flossenträger. Als Fulkren oder Schindeln (Fig. 699 f) werden stachelförmige Schuppen bezeichnet, die paarig oder unpaar dem Vorderrande der einzelnen Flossen aufsitzen können; sie finden sich nur bei primitiveren Formen. Während die älteren Teleostomi fast sämmtlich eine panzerähnliche Körperbedeckung aus dicken, schmelzüberzogenen Ganoidschuppen trugen, zeigen die modernen Formen mit wenig Ausnahmen dünne Cycloid- und Ctenoidschuppen.
Unter dem Namen »Ganoiden« werden gewöhnlich die Teleostomi zu einer besonderen Gruppe unter den Fischen zusammengefasst, welche gewisse primitive Charaktere aufweisen, nämlich eine nicht vollständig verknöcherte Wirbelsäule oder nicht vollständig homocerken Schwanz, Ganoidschuppen, Fulkren oder Jugularplatten, Merkmale, die von primitiveren Charakteren der Sehnerven, des Herzens und des Darmcanals[E] begleitet sein können, wie sie sich auch noch bei Chondropterygii und Dipnoi finden. Den »Ganoiden«[F] werden die in allen diesen Punkten moderneren Teleostomi unter dem Namen »Teleostei« gegenübergestellt. Diese Trennung ist jedoch eine unnatürliche, da sie nahe verwandte Formen auseinanderreisst, dagegen sehr heterogene Formen zusammenfasst.
Unter den Teleostomi lassen sich die folgenden fünf Unterordnungen annehmen.
A.Brustflossen quastenförmig, mit beschuppter Achse; primäres Flossenskelet wohl entwickelt, mit zahlreichen Radien; keiner der Flossenstrahlen erreicht den Schultergürtel (Fig. 678 B, 680). Schwanzflosse diphycerk oder heterocerk.
1. Unterordnung Crossopterygii (p. 560).
B.Brustflossen fächerförmig, fast ganz aus den stark entwickelten Flossenstrahlen bestehend; primäres Flossenskelet rudimentär mit sehr wenig Radien, die sämmtlich den Schultergürtel erreichen; auch der äusserste Flossenstrahl erreicht stets den Schultergürtel (Fig. 678 C).
I.Schwanz heterocerk; die Schwanzwirbelsäule und die äussere Beschuppung erstrecken sich fast bis zum Ende der Schwanzflosse (Fig. 689).
2. Unterordnung Heterocerci (p. 563).
II.Schwanz hemiheterocerk bis homocerk; die Schwanzwirbelsäule und ebenso die äussere Beschuppung erstrecken sich höchstens bis zum Beginn der hinteren Hälfte der Schwanzflosse (Fig. 694, 720).
a.Schuppen schmelzbedeckt, rhombisch oder rhomboidisch, dick oder mit verdickter Innenleiste (Ganoidschuppen — Fig. 687, 699).
3. Unterordnung Euganoidei (p. 568).
b.Keine rhombischen Ganoidschuppen.
1.Cycloidschuppen (selten rhombisch, dann aber klein und dünn); Bauchflossen bauchständig; höchstens ein Stachelstrahl in jeder Flosse; Schwimmblase mit Ausführungsgang (Fig. 711).
4. Unterordnung Physostomi (p. 575).
2.Entweder sind Ctenoidschuppen vorhanden, oder die Bauchflossen sind brust- oder kehlständig, oder es finden sich mehrere Stachelstrahlen in einer Flosse; Schwimmblase ohne Ausführungsgang (Fig. 720).
5. Unterordnung Physoclysti (p. 580).
1. Unterordnung Crossopterygii.
Der Körper ist von rhombischen oder cycloiden Ganoidschuppen bedeckt, der Schädel ist vollkommen gepanzert, der Schwanz ist diphycerk bis heterocerk. Die Brust- (meist auch die Bauch-)flossen sind quastenförmig mit beschuppter kurzer (Fig. 678 B) oder verlängerter (Fig. 680) Achse. Die Radien (Fig. 678 B r) des wohlentwickelten (nur bei Polypterus verknöcherten) primären Flossenskelets sind zahlreich, die Flossenstrahlen (fs) weit vom Schultergürtel getrennt; es sind zwei kurze (Fig. 680) oder eine lange vieltheilige Rückenflosse vorhanden, die auch ganz fehlen kann. Fulkra fehlen, ebenso Kiemenhautstrahlen, statt deren Kehlplatten (Fig. 684 j) sich finden. Nur bei den recenten Formen sind die Wirbel vollständig verknöchert.
Die Crossopterygii zeigen sehr innige Beziehungen zu den Dipnoi (vgl. Fig. 676), in Folge dessen die Abgrenzung beider Gruppen für manche fossile Formen schwierig ist. Nach dem Bau ihrer Gliedmassen können die Crossopterygier als die ursprünglichsten Formen unter den Teleostomi angesehen werden. Sie gehören zu den häufigsten und auffallendsten Fischformen des Devon und Carbon, treten später sehr zurück, sind aber noch in der Gegenwart vorhanden.
Man kann folgende 5 Familien unterscheiden:
A.Wirbel unvollständig verknöchert. Zwei kurze Rückenflossen (sämmtlich fossil).
1.Mehrere einfache Flossenträger für jede Rückenflosse.
a.Schuppen cycloid, dachziegelförmig sich bedeckend.
α.Brustflossen mit verlängerter Achse; Zähne dendrodont.1. Fam. Holoptychiidae.
β.Brustflossen mit kurzer Achse; Zähne labyrinthodont.2. Fam. Rhizodontidae.
b.Schuppen rhombisch.3. Fam. Rhombodipteridae.
2.Nur ein gabelförmiger Flossenträger für jede Rückenflosse.4. Fam. Coelacanthidae.
B.Wirbel vollständig verknöchert; Rückenflosse sehr lang und vieltheilig oder fehlend (nur recent).5. Fam. Polypteridae.
1. Fam. Holoptychiidae.
Wirbel unvollständig verknöchert; zwei sehr kurze Rückenflossen (Fig. 680); Schuppen rundlich, die freie Oberfläche skulptiert (Fig. 681); Brustflossen quastenförmig, spitz, mit verlängerter Achse; Zähne spitzkegelförmig, darunter mehrere mächtige zweischneidige Fangzähne, aus Vasodentin mit verästelten Canälen bestehend (dendrodont). Devon, selten Carbon.
Holoptychius Ag. (Fig. 680). Brustflossen mit sehr langer schmaler beschuppter Achse; Schwanzflosse hetero-diphycerk. Devon. Besonders schöne Exemplare dieser grossen Fischformen finden sich im Old red Sandstone von Schottland; auch im Devon von Irland, Russland, Eifel, Belgien und Nordamerika.
H. nobilissimus Ag. (Fig. 680), Murchisoni Ag. (Fig. 681) u. a. im Old red Sandstone von Schottland.
Dendrodus Owen (mit Unrecht neuerdings zu den Dipnoi gestellt) ist nahe verwandt; Kopfpanzer ohne sichtbare Nähte. Von bedeutender Grösse. Old red Sandstone; häufig in Russland, selten in Schottland.
D. biporcatus Ag. Old red Sandstone von Russland.
Glyptolepis Ag. Vordere Rückenflosse der Afterflosse gegenüber. Devon von Schottland, Russland und Nordamerika.
G. microlepidotus Ag. Old red Sandstone von Schottland.
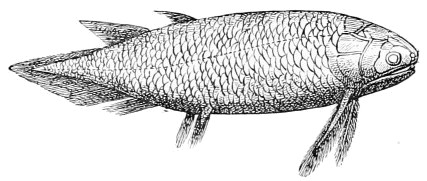
Fig. 680. Holoptychius nobilissimus Ag. Old red Sandstone. Elgin, Schottland.
Fig. 681. Holoptychius Murchisoni Ag. Old red Sandstone von Schottland. Freiliegender skulptirter Theil einer Schuppe.
Fig. 682. Rhizodus Hibberti Ag. Fangzahn. Carbon von Edinburg.
2. Fam. Rhizodontidae.
Der vorigen Familie sehr ähnlich, aber die Brustflossen sind stumpf, abgerundet, mit kurzer Achse, und die Zähne zeigen Vasodentin mit einfachen, nicht verzweigten, aber der Länge nach zusammenhängenden Canülen (labyrinthodont). Carbon, selten im Devon.
Rhizodus Owen (Fig. 682). Sehr grosse Fische, deren 5–10 cm lange zweischneidige Fangzähne an der Basis tief gefaltet sind. Carbon von Schottland, England und Nordamerika.
Rh. Hibberti Ag. (Fig. 682). Carbon von Edinburg.
3. Fam. Rhombodipteridae.
Paläozoische Fische mit rhombischen Schuppen und zwei Rückenflossen.
Osteolepis Val. u. Pentl. (Fig. 683). Brustflossen mit etwas verlängerter Achse. Schwanzflosse hetero-diphycerk. Schuppen und Kopfplatten glatt; die Kopfplatten zeigen Neigung mit einander zu verschmelzen; mittlere Jugularplatten vorhanden. Devon von Schottland und Russland.
O. macrolepidotus Val. u. Pentl. (Fig. 683) aus dem Old red Sandstone.
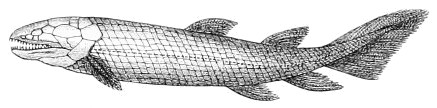
Fig. 683. Osteolepis macrolepidotus Val. u. Pentl. aus dem Old red Sandstone. Schottland. Restaurirt.
Glyptolaemus Huxl. Schuppen und Kopfplatten skulptirt; mittlere Jugularplatte fehlt. Devon von Schottland.
G. Kinnairdi Huxl. Old red Sandstone von Schottland.
4. Fam. Coelacanthidae.
Chordascheide ungegliedert. Bei allen stabförmigen Skeletknochen ist nur die äussere Schicht verknöchert, sie erscheinen daher fossil als hohle Röhren. 2 kurze Rückenflossen und 1 Afterflosse (Fig. 684), jede nur von einem gabelförmigen Flossenträger (ft) gestützt. Paarige Flossen abgerundet, mit kurzer Achse. Schwanzflosse (c) diphycerk. Schuppen dünn und rundlich, oft skulptirt. Zwei grosse Kehlplatten (j). Schwimmblase (s) mit verknöcherter Wandung. Der Kiemendeckel zeigt nur eine Knochenplatte. Carbon bis Kreide.
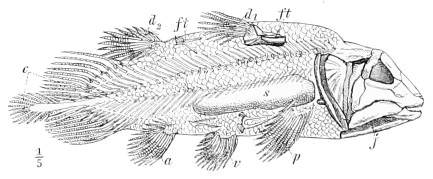
Fig. 684. Undina penicillata Mnstr. Oberer Jura von Eichstätt. a = Afterflosse; c = Schwanzflosse mit pinselförmiger Endflosse; d1 u. d2 = Rückenflossen; ft = gabelförmige Flossenträger; = Jugular- oder Kehlplatten; p = Brustflosse; s = Schwimmblase; v = Bauchflosse.
Undina Mnstr. (Fig. 684). Die grosse diphycerke Schwanzflosse (c) setzt sich in eine pinselförmige Endflosse fort. Freier Theil der Schuppen mit dichtstehenden länglichen Körnern (Fliegeneierähnlich) oder Dornen besetzt. Oberer Jura von Bayern und von Cirin bei Lyon.
U. penicillata Mnstr. (Fig. 684). Oberer Jura von Eichstätt.
Macropoma Ag. Pinselflosse fehlt oder rudimentär. Schuppen mit dichtstehenden scharfen Spitzen bedeckt. Grosse bis 50 cm lange Fische aus der mittleren und oberen Kreide von England, Frankreich, Norddeutschland, Böhmen. Häufig finden sich die spiralig gedrehten 1–2 cm langen Excremente.
M. Mantelli Ag. Obere Kreide von England.
M. forte Fritsch. Obere Kreide von Böhmen.
5. Fam. Polypteridae.
Hierher gehören die in afrikanischen Flüssen vorkommenden recenten Gattungen Polypterus (Fig. 678 B) mit langer vieltheiliger Rückenflosse und Calamoichthys ohne Rückenflosse.
2. Unterordnung Heterocerci.
Dies ist die einzige Unterordnung der Teleostomi, innerhalb deren keine Formen mit vollständig verknöcherten Wirbeln sich ausgebildet haben. Chordascheide stets ungegliedert. Das ganze Innenskelet ist äusserst wenig, wenn überhaupt, verknöchert. Auch am Schädel sind nur Deckknochen bekannt. Die Bezahnung ist schwach. Flossenstrahlen sind in viel grösserer Anzahl vorhanden als Flossenträger, und stehen sehr dicht. Der Schwanz ist ausgezeichnet heterocerk, die Schwanzwirbelsäule sowie die äussere Beschuppung reicht fast bis zu der Schwanzspitze. Der Körper ist meist von dicken rhombischen Ganoidschuppen bedeckt, doch sind einige extremere Formen nackt oder tragen Knochenplatten. Zu den Heterocerci, welche höchst charakteristisch sind für die paläozoischen Schichten seit dem Devon, gehören namentlich die meisten Fische der Dyas. Spärlich finden sie sich noch in der Trias, und nur die merkwürdigen Familien der Störe und Löffelstöre haben sich bis zur Gegenwart erhalten.
Es lassen sich sechs Familien annehmen, unter denen die Acanthodidae eine sehr isolirte Stellung einnehmen, während über die Zusammengehörigkeit der übrigen fünf Familien kaum ein Zweifel herrschen kann. Die typischen Heterocerci aus dem Palaeozoicum, Palaeoniscidae und Platysomidae, können als die Vorläufer der mesozoischen Euganoidei angesehen werden.
A.Körper vollständig mit rhombischen Schuppen bedeckt.
I.Vor jeder Flosse mit Ausnahme der Schwanzflosse ein kräftiger Stachel. Schuppen winzig.1. Fam. Acanthodidae.
II.Flossen ohne Stacheln; meist grössere Ganoidschuppen.
a.Körper wenigstens doppelt so lang als hoch.2. Fam. Palaeoniscidae.
b.Körper höchstens doppelt so lang als hoch.3. Fam. Platysomidae.
B.Körper nackt oder mit einzelnen Reihen von Knochenplatten bedeckt.
I.Bauchflossen kehlständig; Körper so hoch als lang.4. Fam. Dorypteridae.
II.Bauchflossen bauchständig; Körper viel länger als hoch.
a.Körper ganz nackt.5. Fam. Spatulariidae.
b.Körper trägt Knochenplatten.6. Fam. Accipenseridae.
1. Fam. Acanthodidae.
Diese eigenthümlichen Fische (Fig. 686), die zu den ältesten der Heterocerci gehören, erinnern an manche der modernen Tiefseefische, indem sie wie diese eine sehr spärliche Knochenbildung am Kopfe zeigen; unter anderem ist, wie bei gewissen Stomiatidae, mit denen einige der Acanthodiden auffallende Analogien zeigen, ein Kiemendeckel nicht ausgebildet, so dass die Kiemen frei zu liegen scheinen; die überhaupt vorhandenen Kopfknochen sind äusserst dünn. Das Innenskelet ist nicht verknöchert. Der Schwanz ist stark heterocerk; der Körper wird von winzigen quadratischen oder rhombischen dicken Schüppchen bedeckt (Fig. 685), die nicht mit den Rändern übergreifen und die der Haut ein chagrinartiges Aussehen geben; ähnliche Schuppen besitzt die Gattung Cheirolepis unter den Palaeoniscidae. Vor Rücken- und Afterflossen steckt je ein kräftiger Stachel lose im Fleisch (wie bei Selachii), auch vor den Bauchflossen, während der Stachel (erster Flossenstrahl) der Brustflosse mit dem Schultergürtel in Gelenkverbindung steht wie bei allen höheren Teleostomi.