SYSTEMATIK. (continued 15)
Reading edition
P. magnum Cuv., von Pferdegrösse, P. crassum Cuv. (Fig. 968), P. medium Cuv. (Fig. 966), P. curtum Cuv. (Fig. 969), alle aus dem Oligocän von Mitteleuropa.
Paloplotherium Owen (Fig. 967) ist ähnlich, doch fehlen die P1, die P sind noch etwas einfacher als die M, die Zahnkronen zeigen bereits Cement und die Aussenzehen sind sehr dünn. Oligocän von Europa.
P. annectens Owen (Fig. 967). Oligocän von Mitteleuropa.
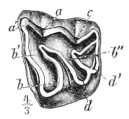
Fig. 970. Anchilophus Desmaresti Gerv. Phosphorite von Quercy. Oberer Molar, stark abgekaut.
Anchilophus Gerv. (Fig. 970, 971), unvollständig bekannt, steht Mesohippus sehr nahe. Die unteren M besitzen die Doppelspitze β’ und die oberen meist nur eine undeutliche Kante an der Aussenwand. Oligocän von Europa.
A. radegundensis Gerv. (Fig. 971), A. Desmaresti Gerv. (Fig. 970). Unteroligocän von Frankreich.
Mesohippus Marsh vermittelt zwischen den amerikanischen Epihippus und Anchitherium. White-River-Oligocän von Nordamerika.
M. Bairdi Leidy. Häufig. Dakota, Nebraska.
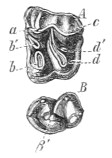
Fig. 971. Anchilophus radegundensis Gerv. von Mauremont. A oberer, B unterer Molar. (¹⁄₁)
Anchitherium H. v. Meyer (Fig. 972–975 A, = Miohippus Marsh). J mit Einstülpung wie bei Equinae, die Mesohippus noch fehlt. P1 ist nur noch einwurzelig, der dritte Lobus des unteren M3 verkleinert. Die Doppelspitze der unteren M wohl entwickelt. Die Seitenzehen sind schon beträchtlich kürzer als die Mittelzehe und berühren gerade noch den Boden. Eine einzige Art im europäischen Miocän; dagegen gehören hierher zahlreiche Arten aus dem nordamerikanischen Miocän. Von dieser Gattung dürften die Equinae abzuleiten sein.
A. aurelianense Cav. (Fig. 972–975 A). Sehr häufig im Obermiocän. Europa.
A. praestans, A. equiceps Cope u. a. John-Day-Miocän von Oregon.
A. ultimum Cope, das »letzte« Anchitherium. Ticholeptus-Epoche. Oregon.
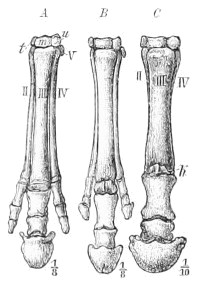
Fig. 972. Linker Vorderfuss von A Anchitherium aurelianense Blainv.; B Hippotherium gracile Kaup; C Equus caballus L. k = Kiel; m = Magnum; t = Trapezoid: u = Unciforme; II–V = Metacarpale des zweiten bis fünften Fingers.
c. Equinae.
In diese Gruppe gehören die extremsten Formen der Familie mit Säulenzähnen, deren Thäler vollständig mit Cement ausgefüllt sind und die daher eine fast ebene Kaufläche besitzen; J mit Einstülpung; nur noch die Mittelzehe berührt den Boden. Ulna und Fibula rudimentär; es sind die einzigen Perissodactyla, bei welchen der Orbitalrand vollständig ist. Fossil sind sie sehr reich in Nordamerika vertreten, zuerst in den Ticholeptusbeds; nur einige Arten auch in der alten Welt und in Südamerika.
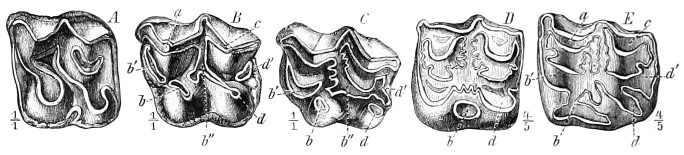
Fig. 973. Obere Molaren von A Anchitherium aurelianense Cuv., stark abgekaut; B Anchitherium aurelianense Cuv., Milchmolar; C Merychippus mirabilis Leidy, Milchmolar; D Hippotherium gracile Kaup; E Equus caballus L.
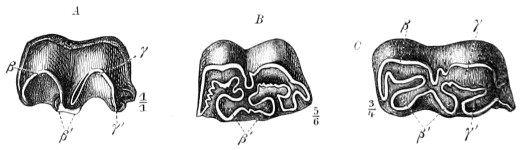
Fig. 974. Unterer Molar von A Anchitherium aurelianense Cuv.; B Hippotherium gracile Kaup; C Equus caballus L.
Merychippus Leidy ist der eigentliche Ausgangspunkt der Equinae. Das Milchgebiss ist noch das von Anchitherium, während das definitive Gebiss dem von Protohippus entspricht. Loup Fork-Epoche von Nordamerika.
M. mirabilis Leidy (Fig. 973 C). Pliocän von Dakota, Nebraska, Texas.
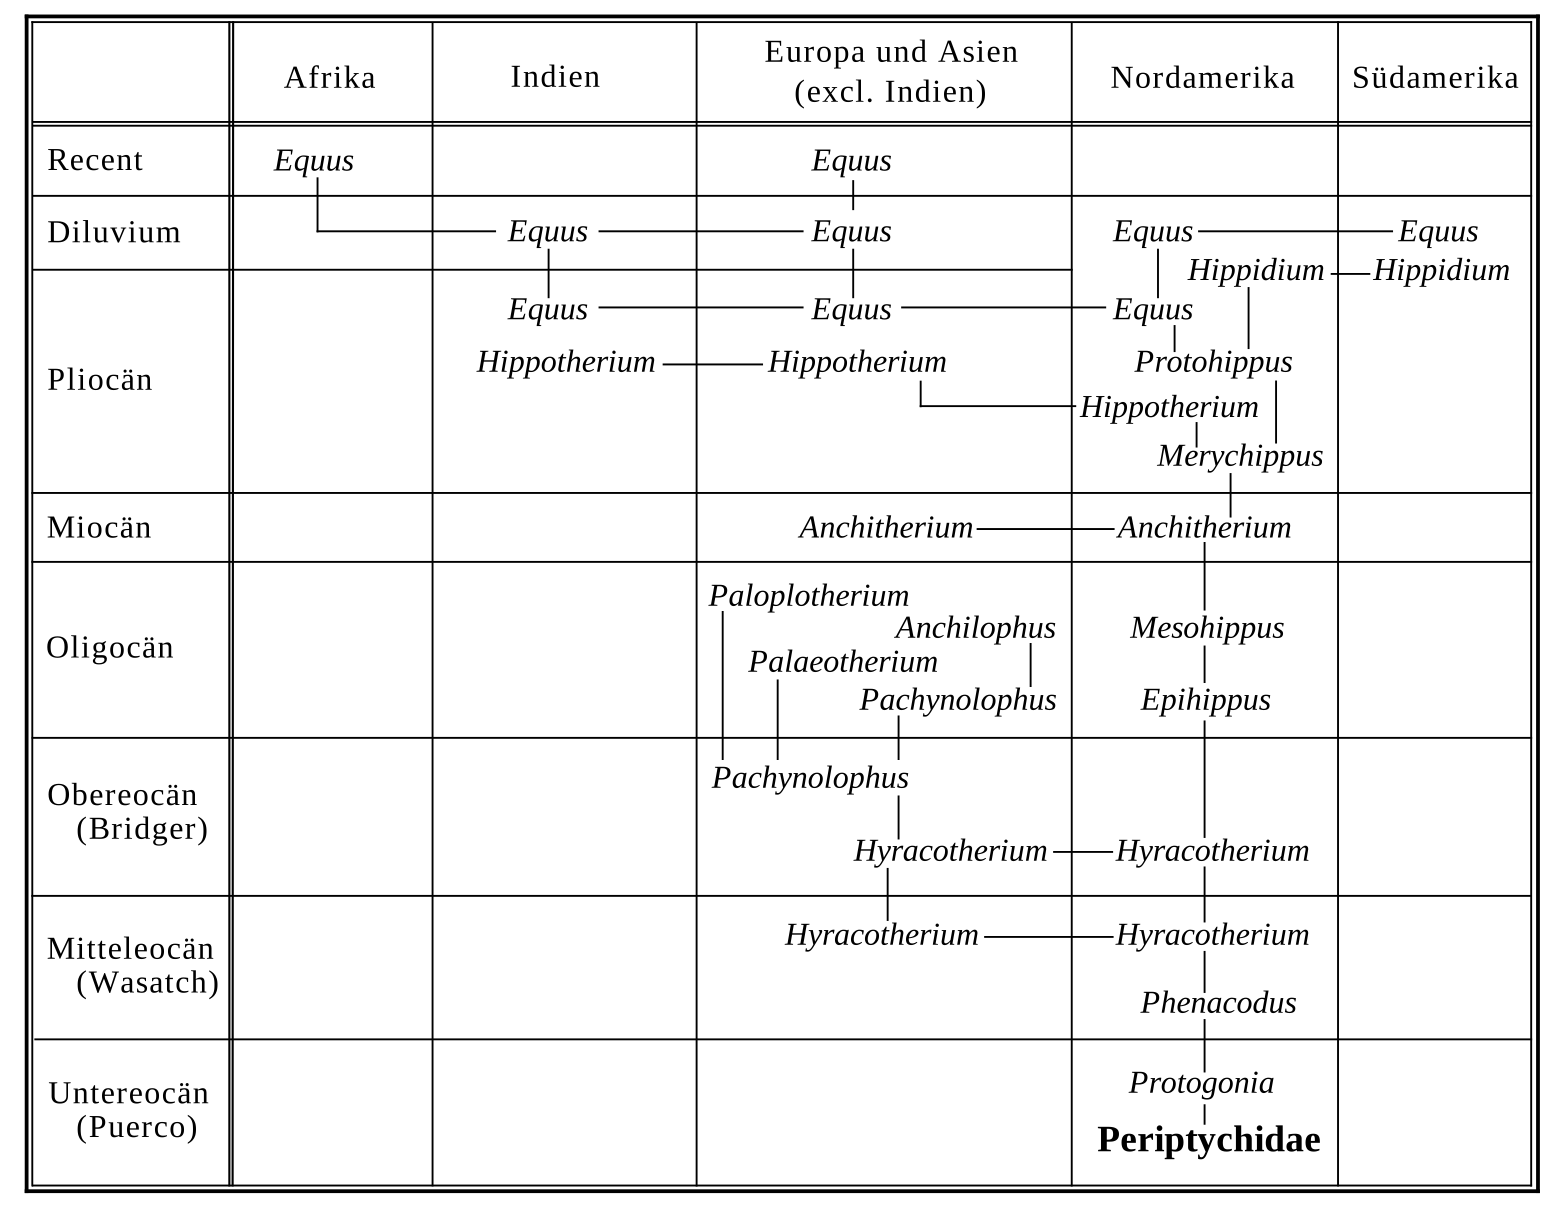
Hippotherium Kaup (Fig. 972–977; = Hipparion Christol). An den oberen M ist der b-Höcker ein cylindrischer Innenpfeiler und vollständig getrennt von den B-förmig verbundenen übrigen Dentinleisten des Zahnes; der Schmelz der oberen und unteren Backzähne ist sehr reich gefältelt; die äusseren Zehen sind sehr schwach und berühren den Boden nicht mehr. Wenige Arten im Pliocän der alten Welt und zahlreiche in Nordamerika (Ticholeptus- und Loup-Fork-Epoche). Die Gattung ist nicht in die direkte Ahnenreihe von Equus zu bringen.
H. gracile Kaup (Fig. 972 B, 973 D, 974 u. 975 B, 976, 977) ist die einzige europäische Art; sehr häufig im Unterpliocän von Europa, Persien und Algier.
H. antilopinum Falc. u. Cautl. Pliocän der Siwaliks von Indien.
H. speciosum Leidy. Loup Fork-Pliocän von Nebraska, Dakota.
H. occidentale Leidy. Pliocän von Dakota.
Protohippus Leidy. b- und d-Pfeiler der oberen M verbreitert, etwa gleich gross, in Verbindung mit den b’- und b’’-Leisten; Füsse noch 3/3zehig, denen von Hippotherium gleichend. Pliocän von Nordamerika. Von dieser Gattung ist die Gattung Equus direkt abzuleiten.
P. sejunctus Cope. Ticholeptus- und Loup Fork-Epoche.
P. perditus Leidy. Loup Fork-Epoche.
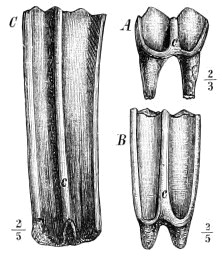
Fig. 975. A Brachyodonter Zahn von Anchitherium. B Mässig hypselodonter Zahn von Hippotherium. C Stark hypselodonter Zahn von Equus. c = Kante auf der Aussenwand des Zahnes.
Equus L. (Fig. 972 C, 973 E, 974 u. 975 C). Der b-Pfeiler der oberen M viel breiter als der d-Pfeiler, beide mit den b’- und b’’-Leisten in Verbindung; Schmelz wenig gefältelt; der untere P1 ist verschwunden, ebenso die äusseren Zehen bis auf die Griffelbeine (Metapodien). Zahnsäulen sehr hoch. Zahlreiche Arten der Gattung Equus finden sich fossil in den »Equus«- und Megalonyx-beds von Nordamerika, einige Arten auch in Südamerika und im obersten Pliocän und Diluvium der alten Welt. Wilde Arten der Gattung finden sich noch lebend in Asien und Afrika, während in Amerika zur Zeit seiner Entdeckung keine Art mehr existirte.
E. occidentalis Leidy, E. excelsus Leidy, E. crenidens Cope. Equus-beds von Nordamerika.
E. curvidens Owen, E. Andium Wagn. Pampasformation. Südamerika.
E. sivalensis Falc. und Cautl. Obere Siwaliks von Indien.
E. Stenonis Cocchi. Oberstes Pliocän von Südeuropa. Von dieser Form kann
E. caballus L. abstammen, das während der Diluvialzeit überall in Europa in grosser Menge lebte (= E. fossilis) und als die Stammform des Hauspferdes anzusehen ist. Es ist leicht möglich, dass neben dieser einen Art noch andere Equus-Arten im europäischen Diluvium lebten, deren Reste sich aber schwer unterscheiden lassen.
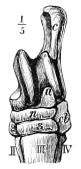
Fig. 976. Hippotherium gracile Kaup. Pliocän von Pikermi. Linker Hinterfuss. a = Astragalus; c = Calcaneus; cb = Cuboid; n = Naviculare; 2, 3 = 2. u. 3. Cuneiforme; II–IV = 2. bis 4. Metatarsale.
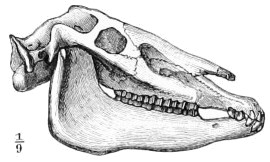
Fig. 977. Hippotherium gracile Kaup. Pliocän von Pikermi. Schädel.
Hippidium Burm. Backzähne wie Protohippus, aber die oberen gekrümmt: Nasenbeine verlängert; 1/1 Zehen. Pliocän von Nord- und Südamerika.
H. spectans Cope. Loup-Fork-Epoche von Nordamerika.
H. principale Lund und H. neogaeum Lund. Pampasformation, Südamerika.
Zeitliche und örtliche Verbreitung der Equidae.
19. Ordnung Artiodactyla.
Die Paarhufer treten in sehr primitiven Formen zuerst im Wasatch-Eocän von Nordamerika auf, erscheinen gegen Ende des Eocän auch in Europa, sind daselbst im Oligocän schon sehr reich entwickelt, erreichen aber ihre grösste Mannigfaltigkeit erst im jüngeren Tertiär der alten Welt; noch heute gehören sie hier zu den blühendsten und hervorragendsten Säugethiergruppen. In Nordamerika, dem Eldorado der Perissodactyla, sind Artiodactyla seit dem Oligocän wohl zahlreich an Individuen, zeigen aber keine so grosse Formenmannigfaltigkeit. Von den zahlreichen Familien der Artiodactyla sind nur zwei, die Oreodontidae und Camelidae, daselbst zu einer sehr hohen Blüthe gelangt. Als Mutterland aller übrigen Paarhufer darf die alte Welt gelten, von der auch Nord- und Südamerika die Mehrzahl ihrer heutigen Artiodactylenformen erhalten haben.
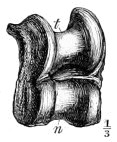
Fig. 978. Palaeomeryx furcatus Hensel. Miocän von Steinheim. Linker Astragalus von vorn gesehen mit oberem (t) und unterem (n) Rollengelenke.
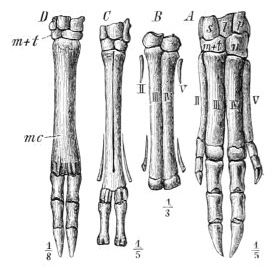
Fig. 979. A Hyaemoschus aquaticus, recent; B Gelocus communis Aym., Oligocän; C Cervus, recent; D Tragoceros amaltheus Roth u. Wagner, Pliocän.
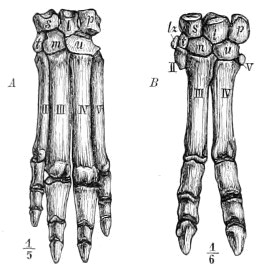
Fig. 980. A Hyopotamus, B Anoplotherium commune Cuv. Gyps von Paris.
Linker Vorderfuss. l = Lunare; m = Magnum; p = Pyramidale: s = Scaphoid; t = Trapezoid; tz = Trapez; u = Unciforme; II–V = 2. bis 5. Metacarpale.
Der Fuss der Artiodactyla hat mit dem der Perissodactyla im wesentlichen nur die alternirende Anordnung der Carpalia und Tarsalia, das proximale Rollengelenk des Astragalus und den unguligraden Bau gemeinsam. Am Femur tritt kein dritter Trochanter mehr auf; der Calcaneus besitzt ein Fibulargelenk, der Astragalus auch ein distales Rollengelenk (Fig. 978); die dritte und vierte Zehe am Vorder- und Hinterfuss sind stets gleich lang und gleich stark (Fig. 979–983). Die erste Zehe findet sich nur bei einer Familie (Oreodontidae) noch erhalten, meist sind nur vier Zehen vorhanden, von denen die beiden mittleren auf Kosten der äusseren immer länger und stärker werden können und schliesslich allein übrig bleiben. Alle denkbaren Stufen von Rückbildung der äusseren Zehen finden sich bei den Artiodactyla. Die Gruppen, bei welchen die mittleren Metapodien nicht nur länger und stärker wurden auf Kosten der äusseren, sondern die letzteren auch von ihren Ansatzstellen verdrängten (das 3. und 4. Metacarpale, bez. Metatarsale setzt sich an Stelle des 2. und 5. auch mit deren Carpale, bez. Tarsale in Verbindung), so dass sie eine breitere und sicherere Stützfläche hatten — »adaptive Reduction« (Fig. 979 A–D), waren offenbar dadurch in grossem Vortheile vor den Formen, bei welchen die 2. und 5. Metapodien wohl kürzer wurden, aber ihren Platz an den Hand- und Fusswurzelknochen hartnäckig behaupteten — »inadaptive Reduction« (Fig. 980 B). Die letzteren Formen waren bereits im Miocän völlig ausgestorben; die adaptiven sind heute die alleinigen Vertreter der Artiodactylen. Die Stärke des Fusses wurde bei vielen Artiodactylen noch dadurch vermehrt, dass, wenn die Verkümmerung der äusseren Zehen weit gediehen war, auch umfangreiche Verschmelzungen stattfanden; es verschmolzen vor allem die beiden mittleren Metapodien mit einander zu dem langen, mit zwei distalen Gelenken versehenen »Canon« (Fig. 979 mc, 983 mt), einem der charakteristischsten Wiederkäuerknochen; es verschmolzen dann ferner auch (Fig. 979) Magnum und Trapezoid (m + t) am Carpus, sowie (Fig. 983) Naviculare und Cuboid (n + c) am Tarsus, mitunter finden noch weitere Verwachsungen statt (Fig. 982 3 + n + c).
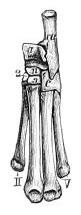
Fig. 981. Caenotherium commune Brav. Phosphorite von Quercy. Linker Hinterfuss.
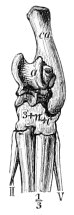
Fig. 982. Hyaemoschus crassus Lart. Miocän von Steinheim. Linker Hinterfuss.
a = Astragalus; c = Cuboid; ca = Calcaneus; n = Naviculare; 2, 3 = 2. u. 3. Cuneiforme; II, V = 2. u. 5. Metatarsale.
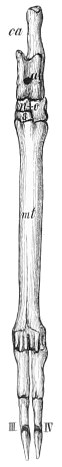
Fig. 983. Gazella brevicornis Gaudry. Pliocän. Pikermi. a = Astragalus; ca = Calcaneus; n + c = Naviculare + Cuboid; 3 = 2. + 3. Cuneiforme; mt = Canon (3. + 4. Metatarsale; III, IV = 3. u. 4. Zehe.
Das Gebiss zeigt ursprünglich 44 Zähne; der P1 geht fast auf allen Linien allmählich verloren. Bei einigen Familien wird das Gebiss vollkommen lückenlos (Fig. 991), während bei den meisten Wiederkäuern sich zwischen C und P eine sehr weite Lücke bildet. Der C wird mitunter hauerartig, oft auch rudimentär. Bei den Wiederkäuern verschwinden die oberen J, meist auch die C, völlig; die unteren C werden oft schneidezahnartig, mitunter die P1 eckzahnartig. Die M sind tetragonodont, nur bei Pantolestes noch trigonodont. Neben den vier Haupthöckern tritt oben bei vielen der älteren Artiodactyla in der vorderen (oder hinteren) Zahnhälfte ein gesonderter grosser Zwischenhöcker b’ (b’’) auf, der als fünfter Haupthöcker bezeichnet wird (Fig. 994); bei den moderneren Formen scheint derselbe sich mit dem b- (oder d-)Höcker vereinigt zu haben. Werden die oberen M lophodont, so geschieht dies, indem einige oder alle Haupthöcker halbmondförmig werden, die offene Seite nach aussen gerichtet (selenodont). Die beiden Aussenmonde sind gewöhnlich zu einer Aussenwand vereinigt, die daher eine mittlere Kante trägt (Fig. 994). Auch an den unteren M können die beiden Aussenhöcker, oder schliesslich alle vier Haupthöcker halbmondförmig werden, die offene Seite nach innen gerichtet. Der untere M3 hat stets einen dritten Lobus (Fig. 984), der obere M3 ist nie kleiner, manchmal aber viel grösser als die übrigen. Die Backzähne sind fast immer heterodont; die oberen P erscheinen bei den höchsten Selenodonten nur wie halbe M, mit einem a- und b-Mond (Fig. 1023 B); bei primitiven Formen sind die oberen und unteren P oft sehr verlängert und bestehen dann nur aus einem klingenförmigen Aussenhöcker. Dafür sind die Milchbackzähne viel complicirter gebaut und der D4 gleicht oben (Fig. 1023 A) wie unten dem M3. Die drei Abschnitte des unteren D4 entsprechen aber keineswegs denen des M3, indem beim D4 der dritte Lobus δ des M3 fast ganz fehlt, und dafür der α-Höcker stark ausgebildet ist (Fig. 984). Die Zahnkrone zeigt sehr verschiedene Höhe, nur einige der modernsten Formen erhalten ganz prismatische Backzähne. Am Schädel treten öfter Gesichtslücken auf; häufig wird der Orbitalrand vollständig. Ein grosser Theil der moderneren Artiodactyla entwickelt paarige Hörner auf den Stirnbeinen. Die Halswirbel sind meist mehr oder weniger opisthocöl; der Zahnfortsatz des Epistropheus wird bei den meisten Wiederkäuern rinnenförmig.
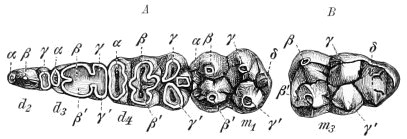
Fig. 984. Dicotyles torquatus. Brasilien. Unterkieferbackzähne. A drei Milchbackzähne und erster Molar, B letzter Molar.
Unter den Artiodactyla können 12 Familien angenommen werden:
A.M trigonodont, oben mit zwei Zwischenhöckern. Pantolestoidea. 4/4 Zehen, die äusseren stark reducirt.1. Fam. Pantolestidae (p. 788).
B.M tetragonodont, die oberen mit fünf Haupthöckern oder Halbmonden; J und C stets entwickelt; die zwei (selten drei, bei Anwesenheit des α-Höckers) Innenhöcker der unteren M mehr oder weniger kegelförmig. Es treten nie Verwachsungen an den Fussknochen ein. Anoplotherioidea.
I.Die Vorderhälfte der oberen M mit zwei (oder drei), die hintere mit drei Höckern oder Halbmonden; höchstens kleine Lücken im Gebiss. 4/4 Zehen.2. Fam. Dichobunidae (p. 789).
II.Die Vorderhälfte der oberen M mit drei, die hintere mit zwei Höckern oder Halbmonden. Fuss wird inadaptiv reducirt.
a.Zwei oder vier Zehen; die oberen M mit fünf, die unteren wie bei den echten Wiederkäuern mit vier Halbmonden; Gebiss zeigt höchstens kleine Lücken.3. Fam. Xiphodontidae (p. 790).
b.2–3/3 Zehen, inadaptiv reducirt. Zahnreihe lückenlos; bei den unteren M sind meist drei kegelförmige Innenhöcker vorhanden, und nur die beiden Aussenhöcker werden halbmondförmig.4. Fam. Anoplotheriidae (p. 790).
c.Vier (selten zwei) Zehen, inadaptiv reducirt. Grosse Lücken in der Zahnreihe; C gross; an den unteren M sind nur zwei kegelförmige Innenhöcker da, und nur die beiden Aussenhöcker können halbmondartig werden.5. Fam. Anthracotheriidae (p. 792).
C.M tetragonodont; der obere und untere M1 und M2 mit vier Haupthöckern oder vier Halbmonden; Fuss wird adaptiv reducirt.
I.Backzähne mit Höckern (selten Querjochen). Suoidea.
a.J nicht auffallend verlängert, unten in geschlossener Reihe. 4/4–3 Zehen.6. Fam. Suidae (p. 794).
b.J hauerartig verlängert, nicht in geschlossener Reihe. 4/4 wohlentwickelte Zehen.7. Fam. Hippopotamidae (p. 796).
I.Molaren oben und unten mit vier Halbmonden. Ruminantia (p. 797).
a.Wenigstens ein oberer J vorhanden. Am Tarsus und Carpus finden nie Verwachsungen statt; Hörner fehlen stets, und der obere C ist nie hauerartig verlängert. Unterer C meist den J ähnlich. Cameloidea.
1.Halswirbel mit Foramen transversarium: vier oder fünf wohlentwickelte Zehen; Zahnreihen meist vollständig und lückenlos.8. Fam. Oreodontidae (p. 799).
2.Halswirbel ohne Foramen transversarium; nur zwei Zehen wohlentwickelt; Gebiss mit grossen Lücken.9. Fam. Camelidae (p. 800).
b.Obere J fehlen fast stets vollständig; unterer C schneidezahnähnlich, den J angeschmiegt, dahinter eine grosse Lücke. Am Tarsus verschmilzt Naviculare stets mit Cuboid, am Carpus Magnum mit Trapezoid. Entweder sind Hörner oder ein hauerartig verlängerter oberer C beim Männchen vorhanden. Booidea.
1.Nur der letzte obere P kann einen wohlentwickelten Innenmond besitzen, die übrigen bestehen wesentlich aus einer verlängerten klingenartigen Aussenwand. Männchen ungehörnt, aber mit hauerartigen oberen Eckzähnen.10. Fam. Tragulidae (p. 802).
2.Mittlere Metapodien sind stets verwachsen. Die oberen P2–P4 besitzen alle einen wohlentwickelten inneren Halbmond, die unteren kräftige Innenfalten.
α.Männchen entweder mit Geweih oder mit hauerähnlichen oberen C.11. Fam. Cervidae (p. 804).
β.Männchen (meist auch Weibchen) mit Hörnern; obere C fehlen ganz.12. Fam. Bovidae (p. 808).
1. Fam. Pantolestidae.
Molaren trigonodont und bunodont, die oberen mit zwei deutlichen Zwischenhöckern. Oberer P4 mit einem Innenhöcker; 4/4 Zehen. Wasatch- und Bridger-Eocän von Nordamerika. Es sind die ältesten bekannten Artiodactyla, wahrscheinlich Stammformen der Camelidae, während sie selbst von Periptychidae abzuleiten sind.
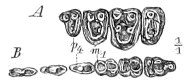
Fig. 985. Pantolestes brachystomus Cope. Wasatch-Eocän von Wyoming. A obere, B untere Backzähne.
Pantolestes Cope (Fig. 985). Wasatch- und Bridger-Eocän.
P. brachystomus Cope. Wasatch von Wyoming.
2. Fam. Dichobunidae.
Bei den hierher gehörigen Formen zeigt die hintere Zahnhälfte der oberen M 3 Höcker. Die P sind in die Länge gestreckt und bilden scharfe Klingen (Fig. 988). Obere C kaum verlängert; kleine Lücken treten mitunter vor oder hinter dem P1 auf; das Gebiss ist sonst lückenlos und vollzählig. Die vier Zehen sind alle wohlentwickelt, die äusseren wenig reducirt (Fig. 986). Kleine zierliche Geschöpfe von der Grösse und Gestalt der lebenden Zwergmoschusthiere; Obereocän bis Untermiocän von Europa.
Dichobunus Cuv. (Fig. 988). Die Höcker der Molaren sind noch dick und fast kegelförmig. Obereocän und Unteroligocän. Ist vielleicht Stammform der Booidea.
D. leporinus Cuv. (Fig. 988). Oligocän.
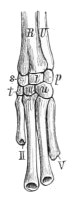
Fig. 986. Caenotherium cadurcense Gerv. Phosphorite von Quercy. Linker Vorderfuss. R = Radius; U = Ulna; l = Lunare; m = Magnum; p = Pyramidale; s = Scaphoid; t = Trapezoid; u = Unciforme. ¾.
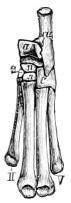
Fig. 987. Caenotherium commune Brav. Phosphorite von Quercy. Linker Hinterfuss. a = Astragalus; c = Cuboid; ca = Calcaneus; n = Naviculare; 2, 3 = 2. u. 3. Cuneiforme. ⅗.
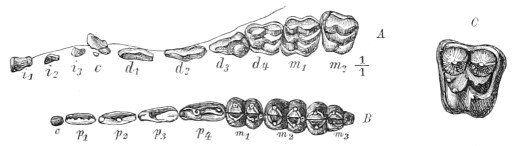
Fig. 988. Dichobunus leporinus Cuv. A Oberkieferzähne; Gyps von Paris. B Unterkieferzähne; Lignite von Apt. C oberer Molar; Gyps von Paris.
Caenotherium Brav. (Fig. 986, 987 und 989). Die Höcker der M sind halbmondförmig geworden, nur die Innenhöcker an den unteren M sind noch ziemlich kegelförmig. Die Reste verschiedener Arten finden sich in zahlreicher Menge im Oligocän, auch im Untermiocän; die Thierchen scheinen heerdenweise gelebt zu haben.
C. commune Brav. (Fig. 987, 989). Phosphorite von Quercy.
C. (Plesiomeryx) cadurcense Gerv. (Fig. 986) mit kleinen Lücken im Gebiss (Annäherung an echte Wiederkäuer) Phosphorite von Quercy.
C. laticurvatum Geoffr., die grösste Art, ohne Lücke im Gebiss; Untermiocän von Allier.
3. Fam. Xiphodontidae.
Diese auf das europäische Oligocän beschränkte Familie enthält kleine zierliche Arten, die manche Aehnlichkeit mit den Anoplotheriidae zeigen, sich andererseits auch gewissen Wiederkäuern etwas nähern. An den M sind sämmtliche Höcker zu Halbmonden ausgebildet, auch die Innenhöcker der unteren M, obwohl dieselben noch an die ursprüngliche Kegelform erinnern. Die vorderen P sind auffallend lang und stellen scharfe Klingen vor (Fig. 990). Die C sind klein, im Unterkiefer gerne den J ähnelnd. Das Gebiss ist meistens lückenlos, mitunter aber beginnen kleine Lücken vor oder hinter dem P1 aufzutreten. Einige Arten scheinen nur zwei Zehen besessen zu haben; der Fuss ist inadaptiv reducirt. Vielleicht gehört die Stammform der Oreodontidae, Protoreodon hierher.
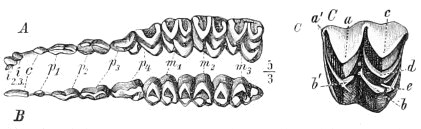
Fig. 989. Caenotherium commune Brav. Phosphorite von Quercy. A obere, B untere Backzahnreihe. C oberer M1 (³⁄₁).
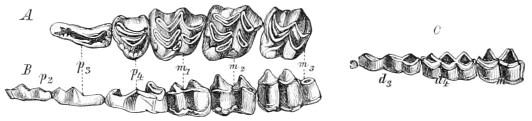
Fig. 990. Xiphodon gracilis Cuv. Oligocän der Débruge. A obere Backzähne von der Kaufläche, B untere Backzähne von aussen, C untere Milchbackzähne von aussen.
Xiphodon Cuv. (Fig. 990, 995 D). Zahlreich im Oligocän.
X. gracilis Cuv. (Fig. 990) war ein schlankes hochbeiniges Thier, sehr ähnlich einem kleinen geweihlosen Hirsch. Gebiss lückenlos. Schwanz lang. Oligocän.
X. (Xiphodontherium Filh.) murinum Cuv. zeigt kleine Lücken im Unterkiefergebiss, indem der obere C sich etwas verlängert, der untere schneidezahnähnlich wird, und dafür der P1 eckzahnähnlich (Annäherung an den Wiederkäuertypus).
4. Fam. Anoplotheriidae.
Diese Familie umfasst eine eigenthümlich specialisirte Gruppe von Paarhufern, die im unteren Oligocän von Europa reich entwickelt ist, gegen das Ende dieser Periode aber erlischt. Besonders eigenthümlich ist der Fussbau, indem ausser den beiden stark entwickelten Mittelzehen wenigstens bei einigen Arten noch die zweite Zehe vollständig ausgebildet ist (Fig. 993); dieselbe ist kleiner als die mittleren und bildet mit denselben einen auffallend grossen Winkel, so dass es möglich ist, dass sie zum Spannen einer Schwimmhaut dienlich war. Der Fuss ist inadaptiv reducirt (Fig. 992). Schwanz sehr lang, mit unteren Bögen.
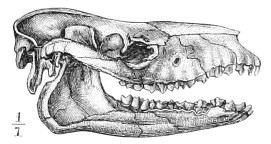
Fig. 991. Anoplotherium commune Cuv. Oligocäner Gyps von Paris. Schädel.
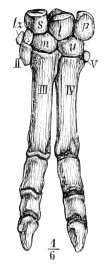
Fig. 992. Anoplotherium commune Cuv. Gyps von Paris. Linker Vorderfuss. l = Lunare; m = Magnum; p = Pyramidale; s = Scaphoid; t = Trapezoid; tz = Trapez; u = Unciforme; II–V = 2. bis 5. Metacarpale.
An den oberen M (Fig. 994) sind die beiden Aussenhöcker und der d-Höcker halbmondförmig, der b-Höcker ist kegelförmig, und von ihm zieht sich der leistenartig verlängerte Zwischenhöcker b’ gegen die Aussenwand. An den unteren M (Fig. 995 A, B) sind die beiden Aussenhöcker ∧- bis halbmondförmig; es sind drei kegelförmige Innenhöcker vorhanden. Der α-Höcker und β’-Höcker sind einander mehr oder weniger genähert (Fig. 995 A–C) und schliessen die Oeffnung des vorderen Halbmonds, während die des hinteren durch den γ’-Höcker geschlossen ist. Gebiss vollzählig, mit 44 Zähnen, und durchaus lückenlos, die C nicht verlängert.
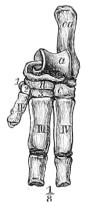
Fig. 993. Anoplotherium latipes Gerv. Lignite der Débruge. Linker Hinterfuss. a = Astragalus; c = Cuboid; ca = Calcaneus; n = Naviculare; 1, 2, 3 = Cuneiforme; II–IV = 2. bis 4. Metacarpale.
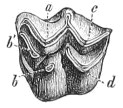
Fig. 994. Diplobune (Anoplotherium) secundaria Cuv. Phosphorite von Quercy. Oberer Molar. (¾)
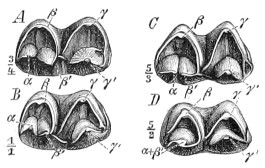
Fig. 995. Untere Molaren von A Anoplotherium laticeps Gerv.; B Diplobune modica Filh.; C D. minor Filh.; D Xiphodon. Phosphorite von Quercy.
Anoplotherium Cuv. (Fig. 842 B, 991–995, = Eurytherium Gerv.) ist eine im europäischen Unteroligocän weitverbreitete und höchst charakteristische Gattung. An den unteren M sind die Höcker α und β’ ganz getrennt.
A. commune Cuv. (Fig 842 B, 991, 992), die grösste Art, und A. latipes Gerv. (Fig. 993, 995 A) häufig im Unteroligocän.
Diplobune Rütim., α- und β’-Höcker nur mit getrennter Spitze. Unteroligocän.
D. secundaria Filh. (Fig. 994), D. modica Filh. (Fig. 995 B), D. minor Filh. (Fig. 995 C), D. bavarica Fraas; Oligocän von Mitteleuropa.
5. Fam. Anthracotheriidae = Hyopotamidae.
Die Anthracotheriiden bilden eine wichtige, vielgestaltige Gruppe alterthümlicher Paarhufer, die sehr reich im ganzen Oligocän von Europa vertreten sind, und deren letzte Glieder noch spärlich im Miocän der alten Welt vorkommen; einige Formen finden sich auch im Oligocän und Miocän von Nordamerika.
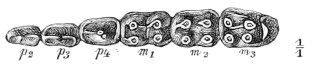
Fig. 996. Cebochoerus minor Gerv. Phosphorite von Quercy. Untere Backzähne.
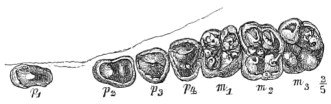
Fig. 997. Choeropotamus parisiensis Cuv. Gyps von Paris. Obere Backzähne.
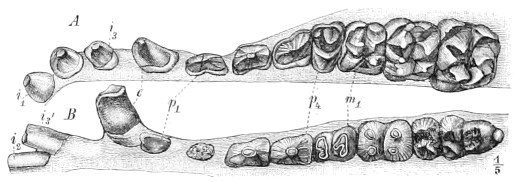
Fig. 998. Anthracotherium alsaticum Cuv. A Oberkiefergebiss. Phosphorite von Quercy. B Unterkiefergebiss. Lignite von Rott.
Sie haben meist vier wohlentwickelte Zehen, die äusseren sind mitunter schwächer als die inneren, nur in einer extremen Gattung sind die äusseren Zehen rudimentär; die Reduction ist »inadaptiv«. Von den fünf Höckern der oberen M gehören drei der vorderen Zahnhälfte an; sie zeigen alle Stufen von der streng kegelförmigen bis zur auffallend halbmondförmigen Ausbildung; an den unteren M sind wenigstens die beiden Innenhöcker immer als Kegel entwickelt. Stets sind kräftige C vorhanden, ebenso Lücken im Gebiss; J oft noch auffallend kegelförmig (Fig. 998). Vielleicht gehört Achaenodon Cope aus den Bridger-beds von Wyoming hierher.
Cebochoerus Gerv. (Fig. 996). An den M sind alle Höcker kegelförmig, der Zwischenhöcker der oberen M klein. Es ist eine sehr primitive Form, wohl Stammform der Suidae. Oligocän von Europa.
C. minor Gerv. (Fig. 996). Phosphorite von Quercy,
C. lacustris Gerv. und C. anceps Gerv. Oligocän von Frankreich und Elsass.
Choeropotamus Cuv. (Fig. 997). Die Haupthöcker der M sind kantig, aber fast noch kegelförmig zu nennen, von zahlreichen kleinen Nebenwarzen begleitet. Die C sind gross. 43 P, oben ist P1 durch eine Lücke getrennt von den übrigen P. Unteroligocän von Europa.
Ch. parisiensis Cuv. (Fig. 997) von Wildschweingrösse. Unteres Oligocän von Frankreich.
Entelodon Aym. (= Elotherium Pom.), eine sehr aberrante Form. Die Höcker der M stellen auffallend abgerundete Kegel dar, mit rudimentären Zwischenhöckern. Die P sind als einfache grosse, dicke Kegel ausgebildet und durch Lücken von einander getrennt. J und C riesig. Von den Seitenzehen sind nur noch stummelförmige Metapodien vorhanden. Oligocän von Europa; Miocän und Oligocän von Nordamerika.
E. magnum Pom. kleiner als Rhinoceros. Oligocän von Europa.
E. Mortoni Leidy, ebenso gross. White River-Oligocän von Nordamerika.
E. imperator Leidy. John Day-Miocän. Oregon. Rhinocerosgrösse.
Anthracotherium Cuv. (Fig. 998, 999), das Kohlenthier; an den oberen M sind die Höcker etwas halbmondförmig, doch noch sehr dick; oben ist der d-Höcker noch rein kegelförmig, die anderen sind etwas verlängert; unten bilden die Innenhöcker spitze Kegel. Die Backzahnreihe zeigt keine grossen Lücken; die J und C sind ansehnlich, letztere kegelförmig.
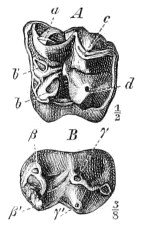
Fig. 999. A Anthracotherium alsaticum Cuv. Oligocän von Villebramar. Oberer Molar. B Anthracotherium magnum Cuv. Oligocän von Cadibona. Unterer Molar.
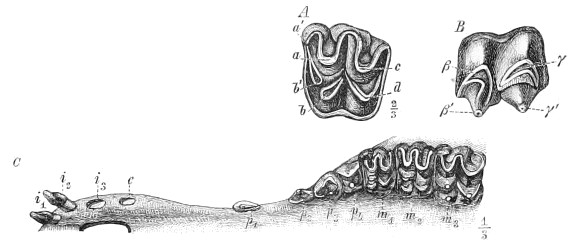
Fig. 1000. Hyopotamus velaunus Cuv. Oligocän von Ronzon. A oberer, B unterer Molar. C Gebiss des Oberkiefers.
Die grösseren Arten mit breitem, niedergedrücktem Schädel, deren Seitenzehen nicht reducirt sind, dürften die Lebensweise der Nilpferde gehabt haben; ihre Reste finden sich besonders viel in Braunkohlenlagern; andere Arten, die kleiner sind, haben stark reducirte Seitenzehen. Sehr verbreitet im Oligocän von Europa; auch im Miocän vorhanden.
A. magnum Cuv. (Fig. 999 B) von Nilpferdgrösse; Seitenzehen nicht reducirt. Oligocän von Europa.
A. alsaticum Cuv. (Fig. 999 A) ist kleiner. Oligocän.
A. Gresslyi H. v. Meyer, die kleinste Art, von Rehgrösse. Oligocän von Württemberg und der Schweiz.
Hyopotamus Owen (Fig. 1000, 1001). An den oberen M sind alle fünf Höcker ausgesprochen halbmondförmig; die Kiefer sind verlängert, und es entstehen grosse Lücken, auch zwischen den vorderen P. Die C scheinen nur beim Männchen von besonderer Grösse gewesen zu sein. Die Seitenzehen sind reducirt; diese Gattung ist mit der vorigen durch unmerkliche Uebergänge eng verknüpft. Oligocän von Europa und Indien; eine Art auch in Nordamerika.
H. velaunus Cuv. (Fig. 1000). Oligocän von Ronzon, Hempstead, Elsass.
H. bovinus Owen von Stiergrösse; ebendaher.
H. americanus Leidy. White River-Oligocän von Nordamerika.
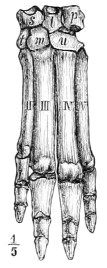
Fig. 1001. Hyopotamus Cuv. Oligocän. Linker Vorderfuss. l = Lunare; m = Magnum; p = Pyramidale; s = Scaphoid; t = Trapezoid; tz = Trapez; u = Unciforme; II–V = 2. bis 5. Metacarpale.
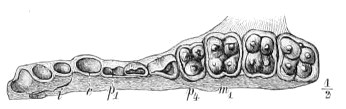
Fig. 1002. Hyotherium (Palaeochoerus) typus Pom. Süsswasserkalk von Billy (Allier). Oberkiefer.
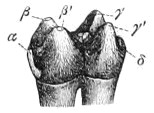
Fig. 1003. Molar von Dicotyles. Recent. (¹⁄₁.)
6. Fam. Suidae.
Die Schweine haben den bunodonten Charakter der Molaren am reinsten bewahrt und weiter entwickelt (Fig. 1002 u. 1003). Bei den primitivsten Formen sind die vier Haupthöcker noch gross und kegelförmig (Fig. 1002); diese Höcker werden dann bei den Suinae allmählich runzelig, niedrig, und zwischen ihnen entstehen kleine Nebenwarzen in immer grösserer Zahl (Fig. 1007). Der M3 kann sich allmählich bedeutend vergrössern (Fig. 1007), bis er endlich bei Phacochoerus auch säulenförmig wird und fast allein die ganze Function der Backzahnreihe versieht, indess die übrigen Backzähne verkümmern und grösstentheils verschwinden. Die C sind stets sehr stark entwickelt und werden bei Suinae oft zu gewaltigen, aufwärts gebogenen Hauern. Die unteren J sind griffelförmig, dicht aneinander liegend, von den oberen werden die mittleren mehr und mehr keilförmig (Fig. 1005); sie können auch ganz fehlen. Manchmal bilden die Höcker auf den M Querjoche. Die Extremitäten zeigen vier Zehen (Fig. 1004), von denen die äusseren meist nicht sehr stark reducirt sind; nur bei manchen Dicotylinae werden sie rudimentär, und die mittleren Metapodien können sogar theilweise verschmelzen; die Füsse sind adaptiv reducirt, doch ohne Verwachsung der Carpalia und Tarsalia.
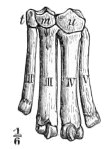
Fig. 1004. Hyotherium. Linker Vorderfuss. m = Magnum; t = Trapezoid; u = Unciforme.
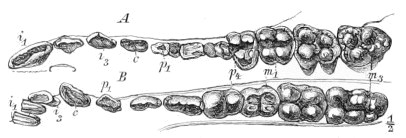
Fig. 1005. Hyotherium Waterhousei Pom. Miocän von Allier. A Gebiss des Oberkiefers. B Gebiss des Unterkiefers.
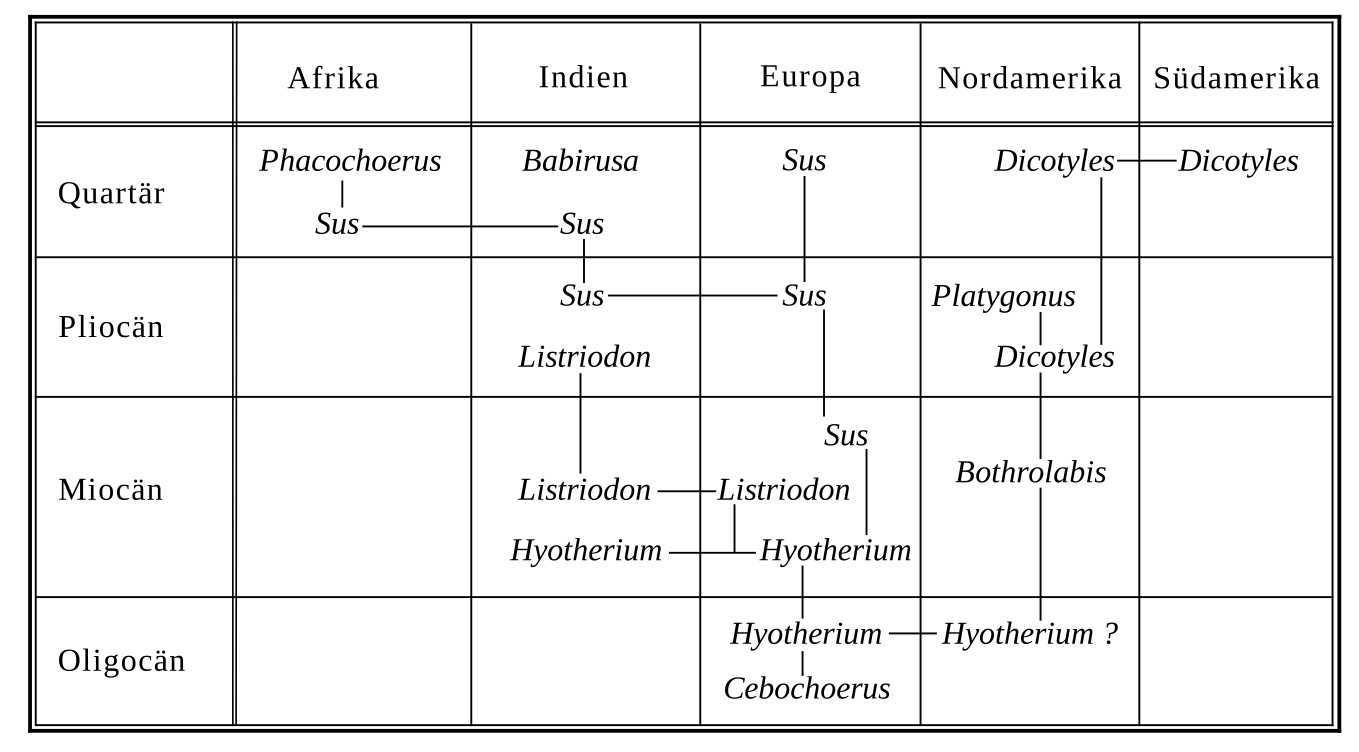
Die ältesten Suidae finden sich im oberen Oligocän von Europa; sie sind vielleicht von Cebochoerus abzuleiten. Suidae sind in der alten Welt sehr formenreich; sie finden sich hier noch lebend, ebenso in Nordamerika, von wo sie auch nach Südamerika gelangt sind.
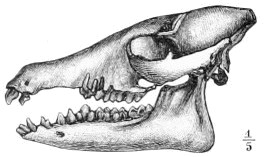
Fig. 1006. Hyotherium Waterhousei Pom. Miocän von Allier. Schädel.
a. Suinae, auf die alte Welt beschränkt.
Hyotherium H. v. Meyer (Fig. 1002–1006, = Palaeochoerus Pomel). Gebiss mit 44 Zähnen. Die C sind mässig und von normaler Richtung: die M zeigen grosse Haupthöcker, bei manchen Arten auch kleine Nebenwarzen; M3 kaum vergrössert. Oligocän und Miocän von Europa und Indien. Es ist die primitivste Form der Suidae.
H. typus Pomel (Fig. 1002 = H. Meissneri H. v. M.). Oberoligocän bis Untermiocän. Europa.
H. Waterhousei Pom. (Fig. 1005 u. 1006). Untermiocän von Frankreich.
H. Soemmeringi H. v. Meyer, nähert sich Sus. Miocän von Europa.
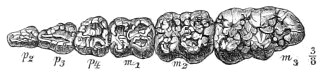
Fig. 1007. Sus erymanthius Roth u. Wagn. Pliocän von Pikermi. Obere Backzähne der rechten Seite.
Sus L. (Fig. 830, 838, 1007). M mit niedrigen Höckern und zahlreichen Nebenwarzen; der M3 zeigt das Bestreben, sich zu vergrössern. Die oberen C biegen sich aufwärts. In Europa seit dem Obermiocän, häufiger erst seit dem Pliocän; besonders reich in den Siwaliks von Indien entwickelt; lebend in der alten Welt; ist bis Celebes und Neuguinea gedrungen.
S. antiquus Kaup. Miocän von Süddeutschland und Frankreich.
S. erymanthius Roth und Wagn. (= S. major Gerv., Fig. 1007), von riesiger Grösse, weit verbreitet im Pliocän von Europa, besonders in Pikermi.
S. giganteus Falc. und Cautl. Siwaliks von Indien.
S. palustris Rütim. Postpliocän von Europa.
Listriodon H. v. M., eine eigenthümliche Suidenform, an deren M die Höcker sich zu Querjochen vereinigen (Tapir-ähnlich), mit grossen hauerartigen C. Miocän von Europa und Siwaliks von Indien.
L. splendens H. v. M. Miocän von Süd- und Mitteleuropa.
Phacochoerus Cuv. ist die extremste Form der altweltlichen Suidae, mit riesigen aufwärts gekrümmten Hauern, im Alter ohne J und P; der M3 mächtig entwickelt, säulenförmig. Lebt in Afrika.
b. Dicotylinae, auf Amerika beschränkt.
Bothrolabis Cope. C gross; vor den oberen C ein tiefer Ausschnitt für die unteren; sonst Hyotherium ähnlich. John Day-Miocän. Oregon.
B. subaequans Cope. Miocän. Oregon.
Dicotyles Cuv. (Fig. 982 C, 984, 1003), wie Bothrolabis, aber drei P; P4 den M ähnlich; 4/3 Zehen; Metatarsen in der proximalen Hälfte verschmolzen. Pliocän und recent in Nord- und Südamerika.
D. torquatus Cuv. (Fig. 982 C, 984, 1003). Diluvial und lebend in Nord- und Südamerika.
Platygonus Lec. Höcker der M bilden Querjoche. Pliocän. Nordamerika.
P. striatus Marsh. Pliocän von Nordamerika.
Zeitliche und örtliche Verbreitung der Suidae.
7. Fam. Hippopotamidae.
Eine moderne, durchaus auf die alte Welt beschränkte Gruppe von Paarhufern bilden die Nilpferde, Thiere von sehr bedeutender Körpergrösse, die sich vielleicht auf Suidae zurückführen lassen; nicht nur die C, sondern auch die J sind bei ihnen zu gewaltigen wurzellosen Hauern und Stosszähnen umgewandelt (Fig. 1009). Die vier Höcker der M sind stark gefaltet, so dass deren Usurflächen kleeblattähnliche Figuren darstellen (Fig. 1008). Der Schädel ist, wie gewöhnlich bei wasserbewohnenden Säugern, sehr flach und breit, der Unterkieferwinkel ist stark nach abwärts gezogen. Die Füsse besitzen vier gleich grosse Zehen. Die einzige Gattung findet sich seit der Pliocänzeit in der alten Welt.
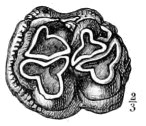
Fig. 1008. Hippopotamus major Falc. Pliocän des Val d’Arno, Letzter oberer Backzahn.
Hippopotamus L. (Fig. 1008 u. 1009). Gebiss 2–3 · 1 · 4 · 31–3 · 1 · 4 · 3. Erscheint zuerst in Indien in den oberen Siwaliks; die älteste Art
H. (Hexaprotodon) sivalensis Falc. und Cautl. (Fig. 1009) besitzt noch drei wohlentwickelte stosszahnähnliche obere und untere J. Pliocän von Indien.
H. (Tetraprotodon) palaeindicus Falc. und Cautl., aus dem indischen Pleistocän, hat unten nur noch die beiden äusseren J stark entwickelt, der innerste ist rudimentär. Der sehr ähnliche
H. major Falc. (Fig. 1008) aus dem obersten Pliocän und dem ältesten Diluvium von Europa zeigt auch den äusseren J beträchtlich verkleinert; im Oberkiefer sind ebenfalls nur noch zwei J vorhanden.
H. amphibius L. lebt noch in den Flüssen und Seen von Afrika und ist von der vorigen Art kaum specifisch zu trennen.
H. (Choeropsis) liberiensis Morton, eine kleine lebende Art aus den Flüssen von Westafrika, besitzt nur noch einen einzigen unteren J.
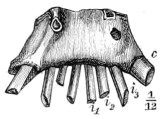
Fig. 1009. Hippopotamus sivalensis Falc. u. Cautl. Siwaliks von Indien. Vorderster Theil des Unterkiefers mit den Schneide- und Eckzähnen.
Ruminantia.
Als »Wiederkäuer« lassen sich eine Reihe von Familien zusammenfassen, die durch eigenthümliche Ausbildung ihres Magens zum Wiederkauen ihrer durchweg aus Pflanzenkost bestehenden Nahrung befähigt sind. Sie stellen die höchste Entwickelung des Artiodactylentypus dar.
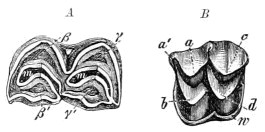
Fig. 1010. A Cervus elaphus L. Recent. Unterer Molar. B Prodremotherium elongatum Filh. Phosphorite von Quercy. Oberer Molar. w = Basalwulst; m = Marken.
Ein Merkmal, das sämmtlichen hierher gehörigen Formen zukommt, ist der Besitz von M, die im Ober- und Unterkiefer aus vier paarweise angeordneten Halbmonden bestehen (Fig. 1010). In ihren typischen Formen (Booidea) kommen den Wiederkäuern ferner noch eine Anzahl von weiteren höchst bezeichnenden Merkmalen zu: Im Oberkiefer fehlen alle J (Fig. 1022); im Unterkiefer wird der C schneidezahnähnlich und bildet mit den echten J eine geschlossene Zahnreihe, die durch eine weite Lücke von der Backzahnreihe getrennt ist. Im Tarsus und im Carpus verwachsen einige Knochen miteinander, und ebenso die beiden mittleren Metapodien unter weitgehender Reduction der äusseren Zehen, die ganz fehlen können; die Reduction ist stets adaptiv (Fig. 979). Orbitalrand vollständig. Höchst bemerkenswerth für Wiederkäuer ist das Auftreten von paarigen Hörnern oder Geweihen auf den Stirnbeinen, entweder nur beim Männchen oder bei beiden Geschlechtern. (Fehlen Hörner, so sind oft die oberen C hauerartig verlängert.) Bei den Hörnern bilden die Stirnbeine lange zapfenartige Auswüchse (Fig. 1027, Hornzapfen), und das dieselben bedeckende verhornte Hautgewebe wird zur Hornscheide; solche Hörner enden stets mit einer einzigen Spitze und werden nie abgeworfen (excl. Antilocapra). Davon zu unterscheiden sind die Geweihe (Fig. 1018–1021); hier bilden die Stirnbeine meist nur verhältnissmässig kurze Auswüchse (Rosenstock); darauf erheben sich die eigentlichen Geweihe, Hautverknöcherungen, die mehr oder weniger reich verzweigt sein können, jährlich abgeworfen werden und wieder neu über dem permanenten Rosenstock gebildet werden, mit welchem sie durch Synostose verbunden sind. Geweihe sind wenigstens bei ihrer Entstehung von Haut und Haaren bedeckt. Hörner, bez. Geweihe treten erst seit dem Obermiocän auf.
In den Stirnbeinen entstehen häufig mehr oder weniger umfangreiche Stirnhöhlen, die die äussere Gestalt des Schädels oft ausserordentlich beeinflussen; diese Stirnhöhlen können sich in die Hornzapfen fortsetzen und selbst mit Höhlen in den Geweihen in Verbindung treten. Wiederkäuer erscheinen zuerst im Oligocän.
Zu den Wiederkäuern müssen auch noch eine Anzahl von Formen gerechnet werden, die sich näher an die übrigen Artiodactyla anschliessen, indem sie noch mehr oder weniger alterthümliche Merkmale zeigen, z. B. unvollständigen Orbitalrand, obere Schneidezähne, lückenloses Gebiss, keine Verwachsung und Reduction der Fussknochen, keine Hörner oder Geweihe. Sie stellen zum Theil die Stammformen der höheren Wiederkäuer dar, zum Theil sind es wiederkäuerartig ausgebildete Formen anderer Abstammung; als solche sind jedenfalls die beiden Familien zu betrachten, welche in Nordamerika entstanden sind, die Oreodontidae und Camelidae.
Die Tragulidae sind in der alten Welt entstanden und nur spärlich in Nordamerika vertreten; von ihnen dürften die gehörnten und geweihtragenden echten Wiederkäuer abstammen, die sicher ebenfalls altweltlichen Ursprunges sind, wenn auch die Cervidae heutigen Tages zahlreich in Amerika vorkommen; die Bovidae dagegen, die höchste Entwickelungsstufe der Artiodactyla, welche ihre höchste Blüthezeit noch kaum hinter sich haben, sind seit jeher fast ganz auf die alte Welt beschränkt und sandten nur ganz vereinzelte Vertreter nach Nordamerika.
8. Fam. Oreodontidae.
Diese Familie enthält eine Gruppe wiederkäuerähnlicher Geschöpfe, die auf das Oligocän und Miocän (selten im Loup Fork) von Nordamerika beschränkt sind (vielleicht auch in Europa und Indien vorkommend), durch ihre überaus reiche Entwickelung aber zu einer der wichtigsten Säugethiergruppen des mittleren Tertiär in jenem Erdtheil gehören. Abgesehen von der Bildung ihrer M besitzen sie übrigens wenige Wiederkäuermerkmale.
Obere J sind vorhanden, aber der untere C ist schneidezahnähnlich, und der P1 hat oft die Gestalt eines Eckzahnes; das Gebiss ist meist lückenlos wie das der Anoplotheriidae; Fussknochen sind nicht verwachsen, auch Radius und Ulna, sowie Tibia und Fibula bleiben getrennt. Im Carpus wird das Lunare nicht vom Magnum getragen. Es sind vier, vorn mitunter selbst noch alle fünf Zehen wohlentwickelt.
Vorläufer der Oreodontidae mit fünfhöckerigen oberen Molaren (Protoreodon Scott and Osborne, ein Xiphodontide?) sind bereits in der Uintaperiode gefunden. Die ursprünglichsten Formen der Familie sind Oreodon und Agriochoerus im White River-Oligocän; die meisten übrigen Gattungen bilden eine zusammenhängende Entwickelungsreihe, die von Oreodon ihren Ausgang nimmt: Eucrotaphus entsteht daraus, indem die Bullae osseae aufgebläht werden; bei Merycochoerus sind die Intermaxillaria mit einander verwachsen; bei Merychyus sind kleine Gesichtslücken vorhanden, die bei Leptauchenia bereits sehr bedeutend sind, unter gleichzeitiger Verkümmerung der Nasenbeine; bei Cyclopidius fehlen aber mehrere J, und bei Pithecistes auch ein unterer P.
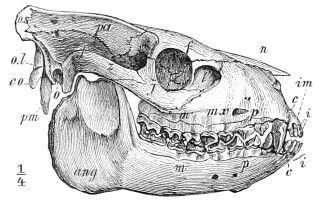
Fig. 1011. Oreodon Culbertsoni Leidy. White River-Oligocän von Nebraska. Schädel von der Seite. ang = Unterkieferwinkel; co = Condyli occipitales; f = Frontale; im = Intermaxillare; j = Jugale; l = Lacrymale (mit Thränengrube); mx = Maxillare; n = Nasale; o = Ohröffnung; o.l = Exoccipitalia; os = Supraoccipitale; pa = Parietale; pm = Processus paramastoidens; t = Temporale mit dem Processus zygomaticus (E); i = Schneidezähne; c = Eckzähne; p = Prämolaren; m = Molaren.
Agriochoerus Leidy. Orbitalrand hinten offen; der P4 oben mit zwei äusseren Halbmonden, unten den M ähnlich. White River- und John Day-Epoche.
A. antiquus Leidy. White River-Oligocän von Nebraska und Dakota.
A. Guyoti Cope. John Day-Miocän von Oregon.
(Dichodon cuspidatus Owen gehört vielleicht in die Nähe von Agriochoerus. Unteroligocän von Europa.)
Oreodon Leidy (Fig. 1011). Orbitalrand vollständig; Bezahnung vollzählig, lückenlos; der obere P4 mit einem äusseren und einem inneren Halbmond, der untere P1 eckzahnartig; 5/4 Zehen. White River-Oligocän.
O. gracilis Leidy, O. Culbertsoni Leidy (Fig. 1011), O. minor Cope. Häufig im White River-Oligocän von Dakota, Nebraska, Colorado und Wyoming.
Eucrotaphus Leidy. 4/4 Zehen. White River- und John Day-Epoche.
E. Jacksoni Leidy. White River- und John Day-Epoche.
E. pacificus Cope. John Day-Miocän von Oregon.
Merycochoerus Leidy. White River- bis Loup Fork-Epoche. Hierher gehören die grössten Arten der Familie.
M. superbus Leidy, M. macrostegus Cope. John Day-Epoche von Oregon.
M. montanus Cope. Ticholeptus-beds von Montana.
Merychyus Leidy (= Ticholeptus Cope), mit einer Lücke zwischen Thränen-, Oberkiefer- und Nasenbein. Ticholeptus-beds.
M. arenarum Cope. Wyoming.
Cyclopidius Cope, mit auffallend grossen Gesichtslücken. 02 Schneidezähne. Ticholeptus-beds. Wahrscheinlich Wasserthiere.
C. simus Cope. Zahlreich in Montana.
C. emydinus Cope. Ticholeptus-beds von Oregon.
9. Fam. Camelidae.
Auch die Camelidae bilden eine Familie von Wiederkäuern, deren Entstehung und Hauptentwickelung in Nordamerika stattfand. Besonders im jüngeren Tertiär sind sie daselbst sehr zahlreich und höchst charakteristisch, und liefern mit den Equidae die bezeichnendsten Formen zur Unterscheidung der einzelnen geologischen Epochen. Ihre ältesten Vertreter, den Tragulidae sehr nahe stehend, finden sich im Oligocän; sie verschwinden in Nordamerika mit dem Beginn der Diluvialzeit. Im jüngeren Pliocän scheinen sie nach Südamerika und Asien gewandert zu sein, wo sie noch gegenwärtig leben.
Sie sind ausgezeichnet unter den Wiederkäuern durch das Fehlen des Foramen transversarium an den Halswirbeln. Ihre Carpalia und Tarsalia verschmelzen nie, dagegen verschmelzen die beiden mittleren Metapodien bei ihnen sehr bald, indess die Seitenzehen gänzlich verschwinden. Der mediane Kiel an dem distalen Metapodialgelenke fehlt an der Vorderseite. Im Gebiss bleibt wenigstens ein oberer J stets erhalten und die P zeigen eine weitergehende Reduction als bei irgend einer anderen Familie der Artiodactyla. Die M zeigen stets eine niedrige Krone mit langen Wurzeln. Sie stammen wohl direct von Pantolestes ab. Die Entwickelung der Familie ist aus folgender Uebersicht der wichtigsten Gattungen zu entnehmen:
A.Aeussere Metapodien rudimentär; Gebiss mit 44 Zähnen.
a.Metapodien getrennt; Ulna und Radius getrennt.Leptotragulus.
b.Metapodien getrennt. Ulna und Radius verschmolzen.
1.Oberer P1 zweiwurzelig, gross.Poëbrotherium.
2.Oberer P1 einwurzelig, klein.Gomphotherium.
c.Metapodien verschmolzen. J3, C, P fangzahnähnlich.Protolabis.
B.Aeussere Metapodien fehlend, mittlere verschmolzen; nur ein oberer J (J3). Oben J, C, meist auch der vorderste P isolirt, fangzahnartig.
a.Oben und unten vier P.Procamelus.
b.Oben vier, unten drei P.Pliauchenia.
c.Oben drei, unten zwei P.
1.Unterer P4 besteht aus zwei Halbmonden.Palauchenia.
2.Unterer P4 mit zwei Halbmonden und zwei hinteren Höckern.Protauchenia.
3.Unterer P4 dreieckig.Camelus.
d.Oben zwei, unten ein bis zwei P; unterer P4 dreieckig.Auchenia.
e.Oben und unten nur noch ein P.
1.Oberer P4 besteht aus zwei Halbmonden.Holomeniscus.
2.Oberer P4 kegelförmig.Eschatius.
Zeitliche und örtliche Verbreitung der Camelidae.
AsienNordamerikaSüdamerika
Recent und DiluviumCamelusAuchenia
Oberes Pliocän: Equus-bedsCamelusEschatius HolomeniscusAuchenia Protauchenia Palauchenia
Unteres Pliocän: Loup-ForkPliauchenia Procamelus Protolabis
Ticholeptus-MiocänProtolabis
John-Day-MiocänGomphotherium
White River-OligocänPoëbrotherium
Uinta-bedsLeptotragulus
Wasatch- u. Bridger-EocänPantolestes
Leptotragulus proavus Scott u. Osborn. Den Tragulidae ähnlich. Utah.
Poëbrotherium Vilsoni Leidy. Gazellenähnlich. Nebraska, Dakota.
Protolabis transmontanus Cope (Fig. 1012). Oregon. Damhirschgrösse.
Procamelus occidentalis Leidy. Hirschgrösse. Neu-Mexico bis Dakota.
P. robustus Leidy. Kameelgrösse. Kansas, Colorado.
Holomeniscus Vitakeri Cope. Lamagrösse. Oregon.
H. hesternus Leidy. Kameelgrösse. Oregon, Californien, Mexico.
Palauchenia Weddelli Gerv. Pampasformation. Argentinien.
Protauchenia Reissi Branco. Pampasformation. Ecuador.
Auchenia III. Obere Pampasformation und recent in Südamerika.
A. intermedia Gerv. Pampasformation von Argentinien.
Camelus L. Siwaliks von Indien und wild lebend in Centralasien.
C. sivalensis Falc. and Cautl. Obere Siwaliks von Indien.
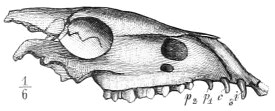
Fig. 1012. Protolabis transmontanus Cope. Ticholeptus-Miocän von Oregon. Schädel.
10. Fam. Tragulidae.
Zu den »Zwergmoschusthieren« gehören die ältesten echten Wiederkäuer von Europa. Dieselben erscheinen bereits im Oligocän in einer Anzahl von Gattungen; ihre primitivsten Formen stehen den primitivsten Camelidae noch sehr nahe; vielleicht sind dieselben auf Dichobunidae zurückzuführen. Bis zur Pliocänzeit finden sich einzelne Gattungen in Europa, wie der noch in Westafrika lebende Hyaemoschus, während in den Siwaliks von Indien der daselbst noch lebende Tragulus erscheint. Auch in Nordamerika sind einzelne Gattungen aus dem White-River-Oligocän und John Day-Miocän bekannt. Unter ihnen finden sich die Stammformen der Cervidae und Bovidae.
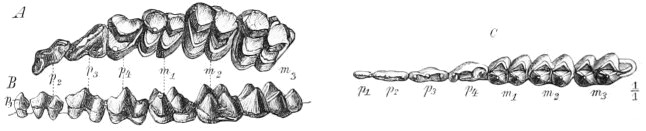
Fig. 1013. Gelocus communis Aym. Oligocän von Ronzon. A obere Backzähne. B untere Backzähne von aussen. C untere Backzähne von der Kaufläche.
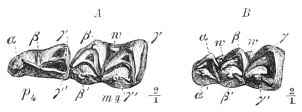
Fig. 1014. Bachitherium curtum Filh. Phosphorite von Quercy. Untere Backzähne. A = P4 und M1; B = D4; w = Basalwarzen.
Die M sind sehr niedrig, die oberen mit einem Basalwulst versehen (Fig. 1015), die Halbmonde sehr dick und plump, der Schmelz rauh. Der obere P4 kann einen inneren Halbmond besitzen (Fig. 1013); die übrigen P stellen meist nur sehr verlängerte Klingen dar, die oberen zeigen höchstens einen unbedeutenden Basalwulst, die unteren ganz schwache Innenfalten. Der obere C ist wenigstens beim Männchen hauerartig verlängert. Obere J sind mitunter noch vorhanden. Am Carpus ist das Magnum mit dem Trapezoid verwachsen, am Tarsus das Cuboid mit dem Naviculare; Ulna und Radius, sowie die mittleren Metapodien sind oft schon verschmolzen, die Aussenzehen meist vorhanden, aber sehr reducirt, ihre Metapodien oft unvollständig. Es sind durchgehends Thiere von geringer Grösse.
Leptomeryx Evansi Leidy. 4/2 Zehen; mittlere Metacarpalia getrennt, Metatarsalia verschmolzen. White River-Oligocän. Nordamerika.
Gelocus Aym. (Fig. 1013 u. 1017 B). Mittlere Metatarsalia verschmolzen, Metacarpalia frei, die seitlichen in der Mitte unterbrochen. Gebiss: 2 · 1 · 3 · 33 · 1 · 4 · 3. Innenhöcker der unteren M noch sehr plump, unterer P1 stiftförmig. Dies ist eine der ältesten echten Wiederkäuerformen. Oligocän von Europa.
G. communis Aym. (Fig. 1013, 1017 B) ist selten in den Phosphoriten von Quercy, häufig im Kalk von Ronzon.
Bachitherium Filhol (Fig. 1014) ähnlich Gelocus, aber 33 P und freie Metatarsalia.
B. curtum Filh. (Fig. 1014). Phosphorite von Quercy.
Prodremotherium Filh. (Fig. 1015) ist vermuthlich ein directer Nachkomme von Gelocus und kann als Stammform der Cervidae und Bovidae angesehen werden. Gebiss: 0 · 1 · 3 · 33 · 1 · 3 · 3; oberer P3 mit innerem Basalwulst, der den inneren Halbmond andeutet, welcher an diesem Zahn erst bei den echten Cervidae wohl entwickelt ist. Die mittleren Metapodien sind verschmolzen, die seitlichen noch weiter reducirt als bei Gelocus. Oligocän von Europa.
P. elongatum Filh. Phosphorite von Quercy.
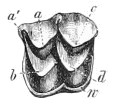
Fig. 1015. Prodremotherium elongatum Filh. Phosphorite von Quercy. Oberer Molar. w = Basalwulst. (⁴⁄₃)
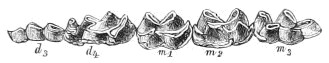
Fig. 1016. Hyaemoschus crassus Lart. Pliocän von Heggbach. Untere Milchbackzähne und Molaren.
Hyaemoschus Gray (= Dorcatherium Kaup, Fig. 1016, 1017 A, C). Mit getrennten mittleren und vollständigen, aber sehr dünnen seitlichen Metapodien. Gebiss 0 · 1 · 3 · 33 · 1 · 3–4 · 3. Die unteren M zeigen an beiden vorderen Monden eine starke, von der Spitze nach hinten verlaufende Leiste. In Europa vom Obermiocän bis zum unteren Pliocän, lebend in Westafrika.
H. crassus Lartet (= Naui Kaup, Fig. 1016, 1017 C). Sansan, Steinheim, Eppelsheim etc.
Tragulus Pallas ist sehr ähnlich, besitzt aber verwachsene mittlere Metapodien. Gebiss 0 · 1 · 3 · 33 · 1 · 3 · 3. In den Siwaliks und lebend in Indien.
T. sivalensis Lyd. Siwaliks vom Bramaputra.
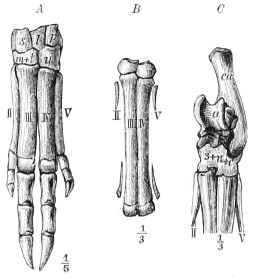
Fig. 1017. A Hyaemoschus aquaticus. Recent. Linker Vorderfuss. B Gelocus communis Aym. Linker Vorderfuss. C Hyaemoschus crassus Lart. Linker Hinterfuss.
11. Fam. Cervidae.
Die Hirsche bilden eine in der Gegenwart auf allen Continenten mit Ausnahme von Australien (und Afrika) reich entwickelte Familie von Wiederkäuern; es ist eine wesentlich altweltliche Gruppe, wenn sich auch in Nord- und Südamerika eine Anzahl eigenthümlicher Formen entwickelt haben.
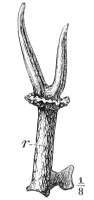
Fig. 1018. Palaeomeryx furcatus Hens. Obermiocän von Steinheim. Geweih eines erwachsenen Thieres. r = Rosenstock.
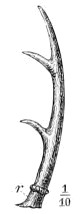
Fig. 1019. Cervus Matheronis Gerv. Unterpliocän vom Mont Lébéron. Geweih. r = Rosenstock.
Die ältesten Arten aus dem untersten Miocän von Europa besitzen noch keine Geweihe; dafür sind bei ihnen die oberen Eckzähne hauerartig ausgebildet (Fig. 1022). Die ersten geweihtragenden Formen treten erst im oberen Miocän auf; doch sind diese Geweihe im Miocän noch sehr niedrig, dichotomisch (Fig. 1018) oder mit wenigen kurzen Zacken versehen, und sitzen auf einem langen Rosenstock; auch ist es bei vielen zweifelhaft, ob sie abgeworfen wurden; erst im unteren Pliocän werden die Geweihe lang, auf kurzem Rosenstock, haben aber noch selten mehr als drei Enden jederseits (Fig. 1019, Sechsender). Reicher verzweigt werden sie erst im oberen Pliocän, und vom obersten Pliocän an treten die überaus mächtigen, üppig (Fig. 1020) verzweigten, oft schaufelartigen Geweihe auf (Fig. 1021 D), die auch eine Reihe der modernen Hirschformen auszeichnen.
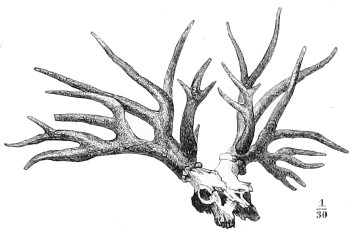
Fig. 1020. Cervus Sedgwicki Falc. Oberes Pliocän. Val d’Arno. Schädel mit Geweih.
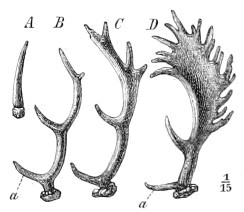
Fig. 1021. Cervus dama L. Recent. Vier Stadien der Geweihentwickelung. a = Augenspross.
Aehnlich verläuft auch die ontogenetische Entwickelung der reicher verzweigten Geweihe, die im ersten Jahre einfach, bei der Neubildung im nächsten Jahre gablig sind und dann jedes Jahr nicht nur grösser werden, sondern meist auch immer mehr Enden erhalten (Fig. 1021). Das Geweih ist während seines Wachsthums von Haut und Haaren bedeckt; hat es die endgültige Grösse erreicht, so vertrocknet die Haut und wird vom Hirsche abgefegt. Bei einer sehr extremen Gruppe (Giraffinae) treten aber kurze plumpe Geweihe auf (Fig. 1026), die nie abgeworfen werden, mit breiter Basis ohne Rosenstock auf dem Stirnbein festsitzen und stets (?) mit Haut und Haaren bedeckt sind. Meist trägt nur das Männchen ein Geweih.
Mittlere Metapodien stets zu einem Canon verwachsen, während die seitlichen Metapodien nur noch in ihrem oberen oder im unteren zehentragenden Theile existiren (Fig. 979 C). Metapodien mit vollständigem distalen Kiel. Gebiss 0 · 1(0) · 3 · 30 · 1 · 3(4) · 3. Obere C meist vorhanden, beim Männchen zu langen Hauern entwickelt, wenn kein Geweih vorhanden ist, rudimentär, wenn dasselbe mächtig ist. Die M sind meist brachyodont, niemals ganz prismatisch, obwohl manche Formen verhältnissmässig hohe Kronen besitzen; sie sind knospenförmig, indem die Krone an der Basis am breitesten ist, selten verschmelzen die Enden der inneren Halbmonde mit den äusseren; gern treten Basalwärzchen auf; der Schmelz ist meist auffallend runzlig. Die oberen P sind kurz und bestehen aus einem äusseren und einem inneren Halbmonde (einem halben Molar ähnlich), die unteren bestehen aus einer Aussenwand mit mehreren kräftigen Innenfalten (Fig. 1023). Der Schädel ist langgestreckt, die Schädelachse gerade. Das Thränenbein ist grubig vertieft, davor befindet sich eine Gesichtslücke.
Es lassen sich drei Unterfamilien unterscheiden:
1.Ohne Geweih, oder mit kurzem Geweih auf langem Rosenstock; Männchen mit hauerartigen oberen C (Fig. 1018, 1022).Cervulinae.
2.Auf kurzem Rosenstock ein langes Geweih, das jährlich abgeworfen wird (Fig. 1019–1021). Obere C rudimentär oder fehlend.Cervinae.
3.Auf breiter Basis aufsitzend ein kurzes, plumpes, oft zeitlebens von Haut und Haaren bedecktes Geweih ohne Rosenstock, das nie abgeworfen wird (Stirnhöcker, Fig. 1026).Giraffinae.
a. Cervulinae.
Hierher gehören die ältesten Hirsche aus dem Miocän von Europa und Nordamerika, die sich in manchen Punkten noch sehr nahe an die Tragulidae anschliessen. In diese Gruppe gehören auch noch die in Asien lebenden hornlosen Moschus und Hydropotes (Moschusthiere) sowie der geweihtragende Cervulus (Muntjakhirsche).
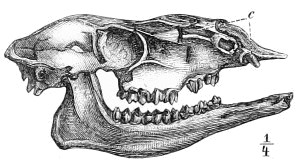
Fig. 1022. Palaeomeryx Feignouxi Geoffr. Miocän von Allier. Schädel. c = verlängerter Eckzahn.
Palaeomeryx H. v. Meyer (= Dremotherium Geoffr., Dicrocerus Lartet, Prox Hensel, Amphitragulus Pomel). Backzähne noch sehr niedrig, mit dicken Monden, mit Basalwülsten, oft auch mit kleinen Basalwärzchen. Der erste Aussenmond der unteren Molaren zeigt an seiner Rückseite einen eigenthümlichen Wulst (Fig. 1023 C, w — Palaeomeryx-Wülstchen). Der obere P2 zeigt oft noch einen unentwickelten inneren Halbmond. Mitunter finden sich unten noch vier P. Einige Arten besitzen schon ein ganz primitives Geweih, andere nicht. Von Tragulus- bis Edelhirsch-Grösse. Miocän von Europa; Siwaliks von Indien. Die Gattung kann als Stammform der übrigen Cervidae sowie der Bovidae gelten.
P. (Amphitragulus) elegans Pomel, geweihlos, unten mit vier P. Untermiocän von Allier; Rehgrösse.
P. (Dremotherium) Feignouxi Geoffr. (Fig. 1022), ohne Geweih, unten mit drei P; kleiner als der vorige. Untermiocän von Allier.
P. (Prox) furcatus Hens. (Fig. 1018, 1023), mit gabligem Geweih und drei P. Rehgrösse. Miocän von Steinheim und Sansan.
P. (Micromeryx) Flourensi Lartet, unten mit vier P, mit Geweih; von Tragulus-Grösse. Miocän von Weissenau, Steinheim und Sansan.
P. eminens H. v. M., fast von Elenthiergrösse,? mit Geweih. Miocän von Süddeutschland und Schweiz.
Blastomeryx borealis Cope, scheint nahe verwandt mit Palaeomeryx. Ticholeptus-beds. Montana.
Cosoryx necatus Leidy u. a., mit hoher Zahnkrone, ist ähnlich. Loup Fork-beds. Nordamerika.
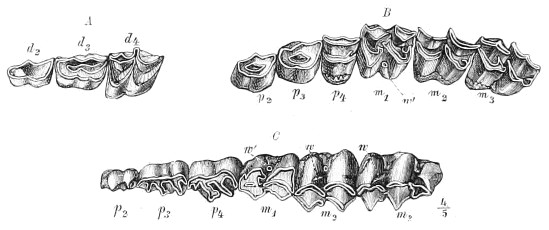
Fig. 1023. Palaeomeryx furcatus Hens. Miocän von Steinheim. A obere Milchbackzähne. B obere Backzähne. C untere Backzähne. w = Palaeomeryxwülstchen; w’ = Basalwarzen.
b. Cervinae.
Hierher gehören die typischen Formen der Hirsche, die vereinzelt schon im obersten Miocän, zahlreich erst seit dem Pliocän in der alten Welt auftreten, erst mit Geweihen von wenig Enden, seit dem Ende der Pliocänzeit auch mit mächtigen, reich verästelten Geweihen. Im oberen Pliocän gelangen sie nach Nord- und Südamerika; daselbst sind sie heute, wie auch in der alten Welt durch zahlreiche Arten vertreten; in Afrika finden sie sich nur in den Mittelmeergegenden.
Cervus L. (Fig. 979 C, 1019–1021, 1024, 1025).
C. lunatus H. v. M. Obermiocän von Süddeutschland.
C. (Capreolus) Matheronis Gerv. (Fig. 1019) ist ein Sechsender, einer der ältesten echten Hirsche, aus dem unteren Pliocän von Frankreich; Geweih ohne Augenspross.
C. (Axis) Etueriarium Croiz. et Job., Sechsender, Geweih mit rundem Querschnitt, mit Augenspross. Oberes Pliocän von Frankreich und Italien.
C. elaphus L., Edelhirsch (Fig. 1024); Geweih reich verzweigt, von rundem Querschnitt, mit Augenspross. Diluvial und recent in Europa.
C. (Eucladoceros) Sedgwicki Falc. (Fig. 1020). Das Geweih ist so mächtig und reich verzweigt wie bei keinem anderen Hirsch. Ohne Augenspross. Oberes Pliocän. England. Italien.
C. (Megaceros) giganteus Blum. (= hibernicus Owen.) Riesenhirsch; Geweih schaufelförmig, mit Augenspross; ein mächtiges Thier aus dem europäischen Diluvium, dessen Geweih 3 m spannen kann. Ganze Skelete finden sich nicht selten in irischen Torfmooren. Nahe verwandt ist
C. (Dama) vulgaris L. (Fig. 1021). Südeuropa.
C. (Alces) palmatus Gray, Elenthier; Geweih schaufelförmig, ohne Augenspross. Diluvial und lebend. Europa.
C. (Rangifer) tarandus L., Renthier; Geweih reich verzweigt, von sehr ovalem Querschnitt, fast glatt, mit Augenspross; es ist die einzige Art mit Geweihen bei beiden Geschlechtern; die noch im Norden von Europa, Asien und Amerika lebende Art ist eine der häufigsten und bezeichnendsten Formen des europäischen Diluviums; fand sich bis zu den Alpen und Pyrenäen.
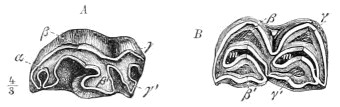
Fig. 1024. Cervus elaphus L. Recent. A unterer P4. B unterer M1. (⁶⁄₇)
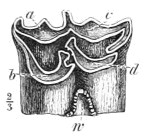
Fig. 1025. Cervus elaphus L. Diluvium von Vögtlinshofen (Oberelsass). Oberer Molar. w = Basalwarze.
c. Giraffinae.
Diese merkwürdigen Cerviden finden sich im unteren Pliocän von Europa und sind sehr reich vertreten in den Siwaliks von Indien; eine Art lebt noch in Afrika. Es sind alles Thiere von bedeutender Grösse. Stets treten sehr umfangreiche Stirnhöhlen auf.
Helladotherium Gaudry; ungehörnt.
H. Duvernoyi Gaudry et Lartet. Unteres Pliocän von Europa, Persien, Indien.
Camelopardalis Gmel. Mit einfachen kurzen, von Haut bedeckten Geweihen (Stirnhöcker). Pliocän von Europa und Indien, lebend in Afrika.
C. attica Gaudry. Pliocän von Pikermi.
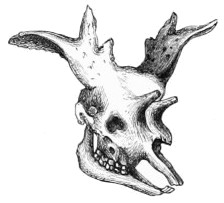
Fig. 1026. Sivatherium giganteum Falc. and Cautl. Siwaliks von Indien. Schädel.
Sivatherium Falc. and Cautley (Fig. 1026), mit zwei Paaren von Stirnhöckern, deren Basis getrennt ist; vorderes Paar kegelförmig, kurz, hinteres gross, verzweigt und schaufelförmig. Siwaliks von Indien.
S. giganteum Falc. and Cautley (Fig. 1026) ist eines der eigenartigsten Thiere aus den Siwaliks von Indien. Von Elenthiergrösse.
Bramatherium perimense Falc. u. Cautl.; ähnlich, aber vordere Stirnhöcker gross, von gemeinsamer Basis entspringend. Siwaliks von Indien.
12. Fam. Bovidae.
In den Bovidae erreicht die Ordnung der Artiodactyla ihre höchste Entwickelung. In fast allen Punkten können sie eine extremere Ausbildung erreichen als die primitiver gebliebenen Cervidae.
Ihre Zahnformel ist 0 · 0 · 3 · 33 · 1 · 3 · 3. Die Backzähne sind zwar oft noch brachyodont, werden aber in vielen Gruppen ausgezeichnet säulenförmig. Ihre Krone ist an der Basis meist nicht breiter als oben, die Oberfläche des Schmelzes ist gewöhnlich glatt; Basalwärzchen zeigen sich nur noch selten. Die Halbmonde zeigen Neigung mit ihren Enden zu verschmelzen. An den oberen P ist stets ein äusserer und ein innerer Halbmond wohl entwickelt, an den unteren sehr kräftige Innenfalten. Obere C sind nur ganz ausnahmsweise noch in rudimentärem Zustande vorhanden. Thränengruben und Gesichtslücken kommen am Schädel manchmal vor. Stets sind die Männchen mit Hörnern versehen, meist auch die Weibchen. Die Hornzapfen sind fast stets einfach, oft hohl und stehen dann mit Stirnhöhlen in Verbindung, die mitunter eine sehr grosse Ausdehnung haben. Während ursprünglich die Hörner sehr nahe bei einander, in nächster Nähe der Augenhöhlen, fast parallel zu einander, aufrecht auf dem Schädeldach stehen, können sie immer weiter nach hinten und weiter aus einander rücken, bis sie bei den extremsten Formen (Fig. 1030) weit entfernt von der Mittellinie sowie von den Augen entspringen, und in fast wagerechter Richtung aus einander streben. Im Zusammenhange damit vergrössern sich die Frontalia in ganz ausserordentlichem Masse auf Kosten der Parietalia und können Dimensionen annehmen, wie sie nicht entfernt in irgend einer anderen Säugethiergruppe erreicht werden. Die mittleren Metapodien sind stets verschmolzen, von den äusseren Zehen sind nur selten noch Rudimente vorhanden. Die ältesten Bovidae sind Antilopen, die sich im oberen Miocän von Europa und Indien finden. Im unteren Pliocän von Südeuropa und Indien sind Bovidae sehr reich entwickelt und haben in der Gegenwart wohl ihre höchste Blüthe erreicht, was Mannigfaltigkeit der Formen, Zahl der Arten und Individuen, sowie Körpergrösse betrifft. Weitaus die Mehrzahl der lebenden Hufthiere gehört hierher. Es ist eine durchaus altweltliche Gruppe, die erst in jüngster Zeit in ganz vereinzelten Arten nach Nordamerika gelangte, während sie bis Südamerika niemals kamen.
Unter der ausserordentlichen Fülle mannigfacher Bovidenformen lassen sich eine Anzahl von natürlichen Gruppen aufstellen, die aber keineswegs sehr scharf von einander geschieden werden können, sondern durch mancherlei Uebergangsformen z. Th. aufs innigste mit einander verknüpft sind. Sie sind hauptsächlich zu unterscheiden durch die Ausbildung der Frontalia, sowie durch den Bau, die Gestalt und Stellung der Hornzapfen.
I.Hörner schlank, meist wenig divergirend, steil auf dem Schädeldach stehend, meist von rundlichem Querschnitt.Antilopen.
A.Kleine Stirnhöhlen; Hornzapfen dicht, auf dem Orbitalrande stehend.
a.Hornzapfen nicht spiralig gedreht.1. Gazellinae.
b.Hornzapfen spiralig gedreht, mit einer Kante.2. Strepsicerinae.
B.Grosse Stirnhöhlen; Hornzapfen hohl.
a.Hörner von mässiger Grösse, entspringen nahe bei einander, zwischen oder dicht hinter den Augen.3. Traginae.
b.Hörner lang, entspringen meist nahe bei einander, dicht hinter den Augen.4. Orycinae.
c.Hörner klein, drehrund, weit von einander entfernt, entspringen mehr oder weniger weit hinter den Augen.5. Cephalophinae.
II.Hörner (beim ♂) kräftig, oft sehr dick, entspringen nahe der Mittellinie dicht hinter den Augen, mit kantigen Hornzapfen. Die grossen Stirnhöhlen setzen sich in die Hornzapfen fort.Ziegen und Schafe.
a.Hörner steil stehend, meist wenig divergirend, in der Sagittalebene stark abgeplattet, mit vorderer Kante.6. Caprinae.
b.Hörner mehr oder weniger stark nach aussen geneigt; Hornzapfen dreikantig, oft stark abwärts gebogen.7. Ovinae.
III.Hörner meist kräftig, entspringen weit von einander an den Seiten der Stirn, hinter den Augen, nach rückwärts oder auswärts gerichtet, ihre Längsrichtung erhebt sich selten über die Stirnbeine. Die sehr grossen Stirnhöhlen setzen sich in die Hornzapfen fort.Rinder.
a.Stirn stark gewölbt, niedrig und schmal; Hörner und Hornzapfen mit flachen Seiten, etwas kantig.8. Bubalinae.
b.Stirn ziemlich flach oder concav, meist sehr breit oder sehr hoch; Hörner meist mit rundem Querschnitt.9. Bovinae.
Die gegenseitigen Beziehungen dieser Gruppen zu einander dürften sich folgendermassen verhalten:
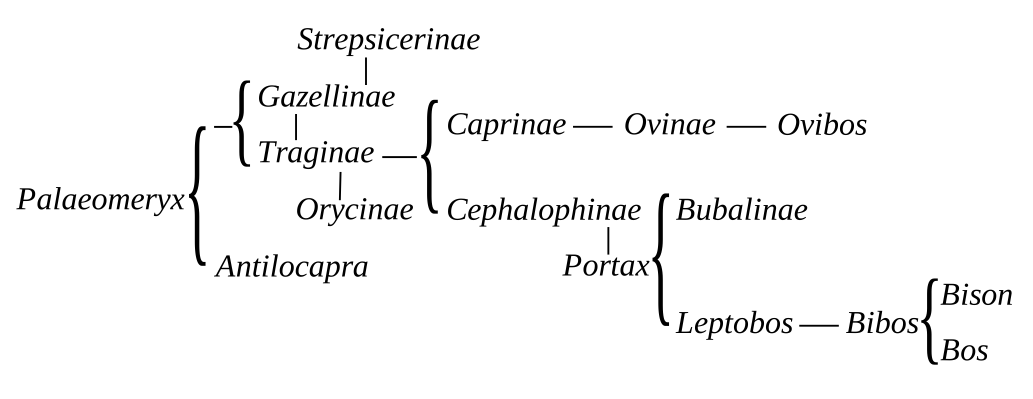
1. Antilopen (Antilopinae).
Die Hörner der Antilopen sind stets sehr schlank, stehen mehr oder weniger steil auf dem Schädeldach und divergiren gewöhnlich wenig von einander. Die Parietalzone ist hier noch meist von bedeutender Grösse, die Frontalzone am kleinsten unter den Bovidae.
a. Gazellinae.
Frontalzone sehr kurz, ohne Stirnhöhlen; Hornzapfen dicht, auf dem Orbitaldach sitzend, oft von ovalem Querschnitt; Zähne meist säulenförmig und scharfkantig. Gazellen sind in der Gegenwart reich vertreten in den Ebenen von Afrika und Asien. Fossil finden sie sich im Pliocän von Europa und Indien.
Gazella brevicornis Gaudry (Fig. 1027 u. Fig. 983) aus dem unteren Pliocän von Pikermi und Wien.
G. deperdita Gerv. aus dem unteren Pliocän von Pikermi, Italien und Frankreich.
Saiga tatarica Forst. ist eine Steppenform von Centralasien und Osteuropa, die im Diluvium bis Frankreich verbreitet ist.
In die Nähe dieser Gruppe gehört die merkwürdige lebende Antilocapra von Nordamerika, deren gegabelte Hörner eine abwerfbare Hornscheide tragen. Stammt wohl von Cosoryx.
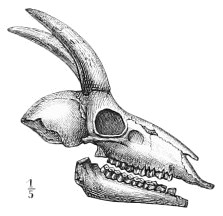
Fig. 1027. Gazella brevicornis Gaudry. Pliocän von Pikermi. Schädel.
b. Strepsicerinae.
Frontalzone ist sehr kurz, ohne Stirnhöhlen; Hornzapfen dicht, zum Theil auf dem Orbitaldach sitzend, spiralig gedreht und mit einer Kante versehen; Gebiss sehr brachyodont, hirschähnlich. Diese heute ganz auf Afrika beschränkte Gruppe, zu der die grössten Antilopen gehören, findet sich im Pliocän auch in Südeuropa und in Indien.
Palaeoreas Lindermayeri Gaudry. Pliocän von Pikermi und Mt. Lébéron.
c. Traginae.
Frontalregion kurz, mit grossen Stirnhöhlen, die sich in die drehrunden kurzen Hornzapfen fortsetzen; dieselben stehen nahe bei einander und nahe der Augenhöhle. Molaren klein, aber oft säulenförmig. Die Gemsen sind Antilopen von massiger Grösse, in der Gegenwart auf die hohen Gebirge von Europa, Asien und Nordamerika beschränkt. Die ältesten Antilopen aus dem Miocän von Sansan sind brachyodont, dürften aber hierher gehören.
Antilope clavata und sansaniensis Lartet. Miocän von Sansan.
d. Orycinae.
Dieselben unterscheiden sich von der vorigen Gruppe eigentlich nur durch ihre bedeutende Körpergrösse und ihre umfangreichen, fast stets prismatischen Zähne, die oft auffallend denen der Bovinae ähneln; sie haben das höchst entwickelte Gebiss unter den Antilopen. Es sind durchgehends grosse Thiere mit meist langen Hörnern, die heute ganz auf die Ebenen Afrikas beschränkt sind. Fossil finden sie sich im Pliocän von Europa und Indien.
Tragoceros amaltheus Gaudry (Fig. 979 D). Pliocän von Pikermi, Wien und Mt. Lébéron.
Palaeoryx Pallasi Gaudry. Pliocän von Pikermi.
Alcelaphus palaeindicus Falc. Siwaliks von Indien.
e. Cephalophinae.
Die Frontalzone ist hier am grössten unter den Antilopen, mit Stirnhöhlen, die sich in die kleinen aufrechten Hornzapfen fortsetzen; dieselben stehen oft ziemlich weit hinter den Augenhöhlen. Molaren mit niedriger Krone. Hierher gehören zahlreiche kleine lebende Arten aus den afrikanischen Ebenen; nur wenige von bedeutenderer Grösse leben in Indien. Die grösste noch in Indien lebende Gattung
Portax H. Smith kann als Stammform der Rinder angesehen werden. Sie findet sich fossil in den Siwaliks und Narbadda von Indien.
P. namadicus Rütim. Narbadda von Indien.
2. Ziegen und Schafe (Ovinae).
Dieselben sind ausgezeichnet durch die starke Knickung der Schädelaxe, sowie der Parietalregion, die zu Gunsten der Frontalregion schon sehr stark verkürzt ist. Die Stirnhöhlen sind gross und setzen sich in die Hornzapfen fort. Hörner gross, oft ausserordentlich dick, unmittelbar hinter den Augenhöhlen und meist nahe bei einander entspringend. Die Backzähne haben eine kleine Kaufläche, sind aber ausgezeichnet säulenförmig, am meisten unter allen Wiederkäuern, und mit scharfen Kanten versehen.
f. Caprinae.
Hörner in der Sagittalrichtung abgeplattet, mit vorderer Kante, wenig divergirend. Es sind Gebirgsbewohner der alten Welt, wo sie auch diluvial vorkommen; spärliche Reste sind aus den Siwaliks von Indien bekannt.
g. Ovinae (s. s.).
Bei den Schafen sind die Hörner meist dreikantig und stark divergirend; sie erreichen hier ihre grösste Mächtigkeit unter den Bovidae. Schafe leben in den Gebirgen von Europa und Asien, zwei Arten auch in Nordamerika. Fossil ist wenig von ihnen bekannt, nur die extremste stark an Rinder erinnernde Form
Ovibos moschatus, der Moschusochse, welcher jetzt noch den hohen Norden von Nordamerika bewohnt, lebte zur Diluvialzeit auch in Europa.
3. Rinder (Bovinae).
Im Gegensatze zu den meisten der bisher behandelten Bovidae sind Rinder in grosser Zahl fossil vertreten, so dass wir mehr fossile als lebende Arten kennen; weitaus der grösste Theil derselben stammt aus Indien, wo sie zahlreich schon in den oberen Siwaliks lebten. Dort ist überhaupt der Entwickelungsherd für diese ganze Gruppe zu suchen; dort kommt auch die muthmassliche Stammform des Rindes, Portax, fossil und noch lebend vor. Europa liefert ebenfalls bereits Formen pliocänen Alters, auch nach Nordamerika gelangt eine Gattung im ? Pliocän.
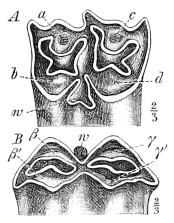
Fig. 1028. Bos primigenius Boj. Diluvium von Vögtlinshofen (Oberelsass). A oberer Molar. B unterer Molar. w = accessorische Pfeiler, aus Basalwarzen entstanden.
Die Rinder stellen die Gipfelformen dar in der Entwickelung der Wiederkäuerreihe; bei ihnen wird das Maximum an Körpergrösse erreicht. Das Gebiss zeigt die höchste Entwickelung; sind die Zahnsäulen bei Schafen auch höher, so sind die Rinderzähne sehr viel voluminöser, es treten accessorische Pfeiler an den oberen und unteren Molaren auf (Fig. 1028 w), und der Schmelz ist oft gefältelt. Das Stirnbein erreicht bei ihnen seine grösste Ausdehnung, nicht nur unter den Wiederkäuern, sondern unter Säugethieren überhaupt, sowohl in der Breiten- als in der Längsrichtung (Fig. 1029, 1030); es überdacht die Schläfenhöhle und zuletzt auch das Hinterhaupt; das Parietale wird allmählich von der Stirnregion auf die Hinterhauptsregion zurückgedrängt. Die Hörner stehen vollkommen seitlich, extracranial, meist weit hinter den Augenhöhlen, nach hinten oder aussen gerichtet, ihre Längsrichtung fällt meist mit der Stirnebene zusammen; sie sind oft sehr mächtig, cylindrisch, platt oder dreieckig.
h. Bubalinae.
Die Stirnzone ist noch verhältnissmässig klein, stark gewölbt; die Scheitelbeine bilden noch einen Theil der Stirn. Der Hornansatz ist der Mittellinie noch ziemlich nahe; die Hörner und Hornzapfen sind meist dreikantig, stets mit flachen Seiten und erheben sich mitunter noch etwas über die Stirnebene. Dies sind alles für Rinder noch wenig fortgeschrittene Merkmale.
Büffel leben noch wild in Indien und Afrika; der älteste Vertreter ist Buffelus sivalensis Rütim. aus den Siwaliks von Indien, dem der riesige B. palaeindicus Falc. aus dem indischen und südeuropäischen Diluvium folgte, von welchem der nordeuropäische diluviale B. Pallasi Rütim. (bei Danzig) nur eine Localform darstellt. Als deren directe Nachkommen sind die indischen Büffel zu betrachten. Auch der Anoa von Celebes (Probubalus depressicornis H. Smith) war in den Siwaliks schon vertreten durch Probubalus occipitalis Falc. und andere Arten.
i. Bovinae (s. s.).
Hierher gehören die extremeren Formen. Die wichtigeren, von einander abzuleitenden Gattungen sind die folgenden (vergl. Tabelle p. 809):
1.Stirn verhältnissmässig niedrig und schmal; Hörner nach rückwärts gerichtet.Leptobos.
2.Stirn lang, dreieckig, oft concav; Hörner oft noch nach rückwärts gerichtet.Bibos.
3.Stirn ein wenig gewölbt, sehr breit, aber nicht sehr lang; Hörner ganz nach auswärts gerichtet, nicht sehr weit hinter den Augen (Fig. 1029).Bison.
4.Stirn ganz flach, sehr lang und sehr breit; Hörner ganz nach auswärts gerichtet, sehr weit hinter den Augen (Fig. 1030).Bos.
Leptobos Rütim. schliesst sich direct an Portax an.
L. Falconeri Rütim. Siwaliks von Indien.
L. Strozzi Rütim. Hornlos. Oberpliocän von Italien (Val d’Arno).
L. Fraseri Rütim. Diluvium von Indien.
Bibos Hodgs. ist von Leptobos abzuleiten.
B. elatus Pom. (= etruscus Falc.) Oberpliocän von Frankreich und Italien (Val d’Arno).
B. palaeogaurus Rütim. Diluvium von Indien. An denselben schliessen sich die verschiedenen in Indien noch lebenden Bibos-Arten an, darunter die Stammformen des zahmen Zebu.
Bison Smith (Fig. 1029).
B. sivalensis Falc. Siwaliks von Indien.
B. ferox Marsh. Pliocän von Nordamerika.
B. priscus Boj. (Fig. 1029). Postpliocän von Europa, Asien und Nordamerika.
B. europaeus Ow. Der Wisent, lebend und subfossil in Europa.
B. americanus Gm. Lebend in Nordamerika.
Bos L. (Fig. 1028, 1030). Das Parietale ist ganz von der Stirnregion verdrängt.
B. planifrons Lyd. Siwaliks von Indien.
B. namadicus Falc. Postpliocän von Indien.
B. primigenius Boj. (Fig. 1028 u. 1030). Der Ur oder Auerochs. Diluvial und subfossil in Europa; ist die Stammform der zahlreichen Rassen des europäischen Hausrindes (B. taurus L.).
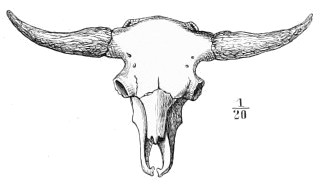
Fig. 1029. Bison priscus Boj. Diluvium. Schädel.
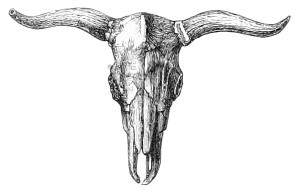
Fig. 1030. Bos primigenius Boj. Diluvium von Athol, Perthshire. Schädel. (¹⁄₃₀)
Geologische Verbreitung der Mammalia.
In der oberen Trias sind, ganz vereinzelt, in Europa, Südafrika und Nordamerika die ältesten Reste von Säugethieren gefunden worden; unter diesen finden sich die primitivsten der bekannten Säugethiere, die Dromatheriidae, mit monophyodontem Gebiss und Backzähnen, die nur eine Hauptspitze und eine nur unvollkommen getheilte Wurzel besitzen, also Formen, welche sich den Pelycosauria in dieser Beziehung noch nahe anschliessen. In grösserer Anzahl finden sich sodann Säuger im Dogger und Malm von England, sowie im oberen Jura und in der obersten (Laramie-)Kreide der Felsengebirge von Nordamerika.
Diese mesozoischen Säuger lassen sich in zwei Ordnungen trennen, deren eine, Multituberculata, wesentlich die Pflanzenfresser, die andere, Pantotheria, die Fleisch- und Insektenfresser umfasst. Es waren durchgehends kleine Geschöpfe, die höchstens Kaninchengrösse erreicht haben. Ihr Bau ist viel zu wenig bekannt, als dass sich über ihre systematische Stellung ein sicheres Urtheil abgeben liesse; nur so viel lässt sich aussagen, dass ihrem Gebiss nach die Pantotheria eine sehr primitive Stufe unter den Säugethieren einnehmen und die Stammformen sowohl der Marsupialia als der Placentalia enthalten dürften, von welchen Gruppen sie bei Beginn der Tertiärzeit nicht mehr zu trennen sind. Die Multituberculata dagegen stellen einen stark specialisirten, wahrscheinlich nicht weiter entwickelungsfähigen Typus dar, der schon im unteren Eocän erlischt. Die Hauptentwickelung der Säuger fällt in die känozoische Periode; gleich zu Beginn der Tertiärzeit, unmittelbar nach dem Aussterben der letzten Dinosauria, treten Säuger in beträchtlicher Artenzahl auf (Puerco-Epoche) und spielen von da an bis zur Gegenwart die hervorragendste Rolle unter den Thieren des festen Landes, sowohl was Körpergrösse als was Formenmannigfaltigkeit anbetrifft. Säugethiere sind die wichtigsten Leitfossilien für sämmtliche continentale Ablagerungen der Tertiärzeit.
Mit Ausnahme der nur noch im unteren Eocän vorkommenden Multituberculata und einer ganz verschwindenden Anzahl kleiner Marsupialia gehören sämmtliche ausserhalb Australiens gefundenen känozoischen Säugethiere zu den Placentalia. Die Differenzirung ist unter denselben im unteren Eocän noch ausserordentlich gering; es lassen sich wohl die vier Gruppen der Landplacentalia, die Sarcotheria, Aganodontia, Primates, Ungulata bereits erkennen, jede vertreten durch ihre primitivsten Ordnungen, nämlich Insectivora und Creodonta, Tillodontia, Prosimiae, Condylarthra; doch stehen deren damalige Vertreter einander so nahe, dass eine scharfe Trennung dieser Gruppen noch kaum möglich ist. Eine grosse Anzahl primitiver Merkmale vereinigt diese sämmtlichen Placentalia des unteren Eocän noch innig mit einander:
Hirn winzig, reptilienartig; Schädel mit Sagittalkamm; Schwanz sehr lang; Beine kurz; Füsse plantigrad, fünfzehig; Astragalus articulirt distal nur mit Naviculare und besitzt ein einfach gewölbtes Tibialgelenk; Radius und Tibia wohlentwickelt, frei; Humerus mit Foramen; Femur mit drittem Trochanter; Gebiss vollständig, ohne grössere Lücken; Molaren brachyodont, und mit Ausnahme von je einer Gattung auch trigonodont und bunodont; Prämolaren einfacher als Molaren, meist einhöckerig etc.
In den folgenden Tertiärepochen aber verändert sich das Aussehen der Säugethierfaunen sehr bedeutend, und je jüngere Perioden der Tertiärzeit erreicht werden, um so mehr verlieren die Säugethierfaunen diesen einheitlichen und primitiven Charakter, der ihnen noch während des unteren Eocän anhaftet. Schon im mittleren und oberen Eocän entwickeln sich mehr und mehr Formen mit lophodonten und tetragonodonten Molaren, sowie mit digitigraden Füssen, im Obereocän Ungulata mit rudimentären Schneide- oder Eckzähnen. Aber erst nach der Eocänzeit treten Formen auf mit gefurchtem Grosshirn, oder mit weniger als 3/3 Zehen, oder mit tetragonodonten oberen Prämolaren. Erst im Unteroligocän finden sich Sarcotheria mit verschmolzenem Scaphoid und Lunare (Carnivora), erst im Oberoligocän Formen mit verschmolzenen Metapodien (Gelocus); erst im Obermiocän erscheinen gehörnte Artiodactyla, und erst im Pliocän Ungulata mit ganz säulenförmigen Backzähnen.
Dabei nimmt die Mannigfaltigkeit der Formen immer mehr zu, und die einzelnen Gruppen sondern sich immer schärfer von einander ab und trennen sich von Epoche zu Epoche immer deutlicher in wohlbegrenzte Ordnungen, Familien u. s. w.
Den grossen Continentalmassen der Erde entsprechend lassen sich bisher vier Regionen unterscheiden, deren jede während der känozoischen Periode ihre eigene Geschichte in Bezug auf Säugethiere hat:
Die eurasiatische oder altweltliche Region (Europa, Asien, Afrika);
Die nordamerikanische Region (mit Centralamerika);
Die südamerikanische Region;
Die australische Region.
Dieselben bilden vier von einander stets mehr oder weniger scharf getrennte Landmassen, die geradezu als ebenso viele Entwickelungsherde für Säugethiere bezeichnet werden müssen. Jede dieser vier Regionen ist dadurch ausgezeichnet, dass in ihr eine Anzahl grosser und wichtiger Säugethiergruppen, wenn auch nicht ihre erste Entstehung, so doch ihre Hauptentwickelung genommen haben in der Art, dass dieselben entweder ganz auf die betreffende Region beschränkt blieben, oder erst in späteren Epochen nach den benachbarten Regionen einwanderten. Vollständig abgeschlossen waren diese Regionen nicht von einander; wenigstens zeitenweise standen sie in Verbindung, und es wanderten Formen der einen in andere Regionen ein; doch ist dieser gegenseitige Austausch während der Tertiärzeit nie so stark gewesen, dass dadurch die Eigenartigkeit der Fauna einer dieser Regionen verwischt worden wäre.
Nachstehend sind die Säugethiergruppen aufgezählt, welche für jede der vier Regionen ganz besonders charakteristisch sind, indem sie während der Tertiärzeit entweder vollständig auf eine solche Region beschränkt oder doch in anderen nur sehr spärlich vertreten wären:
Eurasiatische Region: Insectivora (mit Ausnahme der Ictopsidae); Viverridae, Mustelidae, Ursidae, Hyaenidae; Lagomyidae; Cynopithecidae und Simiidae; (Proboscidea); gehörnte Rhinocerotidae; Anoplotherioidea, Suoidea (mit Ausnahme der Dicotylinae), Booidea.
Nordamerikanische Region: Ictopsidae; Miacidae (Stammformen der Carnivora); Nimravinae; Tillodontia; Leporidae; Condylarthra; Amblypoda; Palaeosyopinae, Brontotheriinae, Hyracodontinae, Equinae; Pantolestidae, Oreodontidae, Camelidae, Dicotylinae.
Südamerikanische Region: Caviidae, Chinchillidae; Edentata; Toxodontia (incl. Macrauchenia).
Australische Region: Marsupialia (mit Ausnahme der Didelphidae).
Noch dürfte aber eine weitere Region zu entdecken sein, in der sich eine Reihe von Säugethiergruppen entwickelt haben müssen, welche im oberen Miocän und unteren Pliocän ganz unvermittelt in Europa und Indien erscheinen, so vor allem Proboscidea, Antilopinae, Giraffinae, Hippopotamidae, Simiae, Manidae und Orycteropus.
Die alte Welt bildet in Bezug auf Säugethiergeschichte ein zusammenhängendes Ganze, soweit die bisher entdeckten Faunen in Betracht kommen. Die europäischen Säugethiere sind wenigstens seit dem oberen Eocän ziemlich gut bekannt, die indischen seit dem Miocän; Afrika hat aber bisher noch keine tertiären Säugethiere geliefert, und es kann daher nur dessen heutige Thierwelt in Rechnung gezogen werden, welche sich der Hauptsache nach innig an die Pliocänfauna von Europa und Indien anschliesst, während die so eigenthümliche Fauna von Madagascar vielleicht noch am meisten Aehnlichkeit mit der Oligocänfauna von Europa zeigt.
Aus dem unteren Eocän von Europa, der »Faune cernaysienne«, kennen wir eine Anzahl insektivoren- und creodontenartiger, meist sehr kleiner und dürftig erhaltener Formen, denen sich wie in Nordamerika die letzten Nachkömmlinge der mesozoischen Multituberculata anschliessen. Die spärlichen Säugerreste aus dem Mitteleocän kommen auf Formen hinaus, welche in Nordamerika sehr reich entwickelt sind, während die etwas zahlreicheren Geschlechter des Obereocän, unter denen besonders Lophiodon neben anderen Perissodactyla hervorragt, den nordamerikanischen wohl sehr nahe stehen, aber nicht mit ihnen identisch sind.
Ein erstaunlicher Reichthum von Säugethieren ist uns aus dem europäischen Oligocän überliefert. Zu dieser Zeit, als noch ein grosser Theil von Mitteleuropa vom Meere bedeckt war, lebte auf dem Festlande eine reiche Thierwelt, welche besonders aus französischen Fundorten bekannt ist. Zahllose wohlerhaltene Reste dieser Säuger liegen vor allem in den Phosphoriten von Quercy, in Spaltausfüllungen von unter- und oberoligocänem Alter, mit denen aber wohl auch manche untermiocäne und obereocäne Formen gemischt sind, so dass sich für viele Gattungen das genauere Alter ihres Auftretens nicht mit voller Sicherheit angeben lässt. Wir treffen darunter zahlreiche Formen, die als Stammformen moderner Säugethiere ein grosses Interesse verdienen. Im Oligocän erscheinen nun neben den im Eocän bereits vorhandenen Creodonta und Prosimiae zum ersten Male in Europa zahlreiche Carnivora, Rodentia und ein Heer von Artiodactyla, die letzteren grösstentheils in den primitiveren Formen mit fünfhöckerigen oberen Molaren, und mit ihnen eine grosse Zahl von Palaeotheriinae. Die hervorragendsten Geschlechter des Unteroligocäns sind u. a. Palaeotherium, Anoplotherium, Xiphodon, Hyaenodon, während im Oberoligocän Caenotherium, Anthracotherium, Hyopotamus und Gelocus besonders auffallen, letzteres die Stammform der für die alte Welt so ungemein charakteristischen echten Wiederkäuer. Wenn es auch nicht ganz unwahrscheinlich ist, dass eine grosse Anzahl dieser Formen in letzter Linie auf nordamerikanische Eocänformen zurückzuführen ist, so hatten sich bis zur Oligocänzeit dieselben doch schon so weit in Europa fortentwickelt, dass diese ganze Fauna nur noch wenige Aehnlichkeit zeigt mit der etwa gleichzeitigen White-River-Fauna von Nordamerika. Nur einige Gattungen (s. unten) sind beiden Regionen gemeinsam.
Der Beginn der Miocänzeit ist in Europa vor allem dadurch charakterisirt, dass vorher oder kurz nachher eine grosse Reihe primitiver Säugethiergruppen aus Europa verschwinden, welche bis dahin eine wichtige Rolle spielten. Dazu gehören die Creodonta, zahlreiche Rodentia, besonders Hystricomorpha, deren nächste Verwandte gegenwärtig noch in Südamerika leben; ferner die Prosimiae, die bisherigen Palaeotheriinae, sowie fast alle Artiodactyla mit fünfhöckerigen Molaren; dafür finden sich sehr zahlreiche Carnivora, Suidae und Cervidae, unter letzteren die artenreiche Gattung Palaeomeryx; zu ihnen treten als Einwanderer aus Nordamerika verschiedene der dort so reich vertretenen Perissodactyla, wie Protapirus, Chalicotherium, und vor allem die ersten noch hornlosen Rhinocerotidae, welche sich nachher so reich in der alten Welt entwickelten; diese Einwanderung fand übrigens vielleicht schon während des Oberoligocän statt (Ronzotherium). Weiter entwickelt erscheint diese Thierwelt im oberen Miocän, wo zum ersten Male echte Ursidae und die Gattung Sus auftritt; an Stelle von Protapirus findet sich Tapirus, die Cervidae und Rhinocerotidae tragen Hörner; dazu kommen wieder fremde Einwanderer, Anchitherium aus Nordamerika und aus unbekannter Heimath die ersten Proboscidea, Simiidae und Antilopinae, sowie Felis und Machairodus.
Während der älteren Tertiärzeit bedeckte wohl eine üppige tropische Sumpflandschaft das Festland von Europa; schon seit Beginn des Miocän aber scheinen sich Grasflächen mehr und mehr über Europa auszubreiten; an Stelle der schwerfälligeren Sumpfbewohner traten allmählich flüchtigere Steppenthiere und Formen, deren Gebiss sich mehr und mehr an ausschliessliche Grasnahrung anpasste, bis zu Beginn des unteren Pliocän die Thierwelt Südeuropas einen Charakter erhält, der in hohem Maasse an die des heutigen tropischen Afrika und Indien erinnert und wohl auf ein ähnliches Landschaftsbild schliessen lässt: Weite Grasflächen, bevölkert von Heerden grosser Antilopinae, Giraffinae, Equinae neben Proboscidea, Rhinocerotidae, Simiae, in manchen (waldigen) Gegenden zahlreiche Cervinae mit noch wenig verästeltem Geweih, und vereinzelt auch Edentata. Die Equinae sind vertreten durch Hippotherium, das wohl aus Nordamerika stammt. Die Heimath der neu erschienenen Giraffinae und Edentata ist noch unbekannt.
Das bis dahin tropische Klima erreicht nun in Europa mit dem oberen Pliocän allmählich einen subtropischen Charakter; damit verschwinden hier die grossen Antilopinae, Giraffinae und zuletzt auch die Simiidae; reicher Ersatz ist aber vorhanden; an Stelle von Hippotherium tritt allmählich, wohl ebenfalls aus Nordamerika stammend, Equus (die Stammform der lebenden Pferde); neben Mastodon erscheint Elephas, der sich in Indien entwickelt haben dürfte; Rinder stellen sich zahlreich ein, ebenso Cervinae mit reich verästeltem Geweih; dazu sind mächtige Rhinocerotidae noch vorhanden, neben Sus erscheint Hippopotamus; die Gattungen Ursus und Canis treten zum ersten Male auf. Mit zunehmender Kälte verschwindet aber nun beim Anrücken der Eiszeit allmählich ein grosser Theil dieser oberen Pliocänfauna aus Europa. In Indien dagegen, das während des (Oberoligocän) Miocän und Pliocän ein zusammenhängendes Faunengebiet mit Europa bildete und eine ähnliche, nur womöglich noch üppiger entwickelte Fauna besass — die Siwalikfauna, mit einer Fülle von Proboscidea, Suidae, Giraffinae und Bovinae — erhielt sich ein grosser Theil dieser Formen, und ihre Nachkommen leben daselbst theilweise noch bis zum heutigen Tage; andere sind in Indien verschwunden, finden sich aber noch im tropischen Afrika, dessen heutige Fauna in innigstem Zusammenhange steht mit der einstigen europäisch-indischen Pliocänfauna.
In Europa äusserte die Eiszeit ihre Wirkungen, während der die Pliocänfauna allmählich durch eine mehr arktische Fauna ersetzt wird; deren Hauptvertreter sind Mammuth, wollhaariges Rhinoceros, Wildpferd, Riesenhirsch und Renthier, Moschusochse, Ur und Wisent, Höhlenbär, Höhlenlöwe und Höhlenhyäne, Lemminge u. s. w.; ihr Zeitgenosse war der Mensch. Heute finden sich in Europa nur noch die Reste dieser Diluvialfauna: manche Formen sind auf das Hochgebirge und in den hohen Norden zurückgedrängt; ein grosser Theil ist ausgestorben.
In Nordamerika sind im Gegensatze zu Europa auch eine sehr grosse Anzahl eocäner Säugethiere bekannt. Die geologische Entwickelung vollzog sich daselbst während der ganzen Tertiärzeit viel ungestörter als in Europa, und die daselbst in den einzelnen Epochen neu auftretenden Säugethiergattungen scheinen grossentheils die direkten Nachkömmlinge von Formen aus den älteren Epochen Nordamerikas zu sein, von denen ja wohl auch eine grosse Anzahl europäischer Formen abstammen dürfte. Die fossilen Reste der nordamerikanischen Tertiärsäugethiere finden sich grösstentheils zu beiden Seiten der Felsengebirge in ehemaligen Seebecken, an deren Ufern diese reichen Faunen einst lebten.
Einen überraschenden Formenreichthum liefert Nordamerika schon im unteren (Puerco-) Eocän, aus welchem Cope gegen 90 Säugethierarten aufzählt. Fast die einzigen Hufthiere daselbst sind Condylarthra und zwar meist Periptychidae, die Fleischfresser sind Creodonta, ausserdem giebt es hier Prosimiae und Tillodontia, und endlich, wie in Europa, die letzten Vertreter der mesozoischen Multituberculata. Die gewaltigsten der damaligen Säugethiere erreichen nur etwa Bärengrösse.
Bedeutend verändert ist diese Fauna zur Wasatch-Epoche; Condylarthra sind noch zahlreich vorhanden, aber keine Periptychidae; die dominirende Rolle unter den Hufthieren spielen Coryphodontia, manche davon von Stiergrösse, die grössten Säugethiere jener Zeit; neben ihnen treten die ersten noch kleinen und sehr primitiven Perissodactyla (Hyracotherium) und Artiodactyla (Pantolestes) auf, sowie die ersten Rodentia.
Im oberen (Bridger-) Eocän sind die bezeichnendsten Formen die gewaltigen Dinocerata, grösser als die lebenden Nashörner; auch Chalicotheriidae und Tapiridae sind hier sehr reich vertreten. Eine Uebergangsperiode zum Oligocän ist die Uinta-Epoche.
Mit dem Beginn des White River-Oligocän verschwinden die Tillodontia und Amblypoda; zu ausserordentlicher Blüthe kommen hier verschiedene Familien der Perissodactyla, welche, im Gegensatze zu Europa, hier noch sehr viel formenreicher sind als die Artiodactyla; letztere aber zeichnen sich durch einen ausserordentlichen Individuenreichthum aus. Die hervorragendsten Formen sind die mächtigen Brontotheriinae, die fast Elephantengrösse erreichen; neben Hyracodontinae und Palaeotheriinae treten zum ersten Male in noch sehr primitiven Formen Rhinocerotidae auf. Von Artiodactyla erscheinen hier zuerst die für Nordamerika so charakteristischen Oreodontidae und Camelidae, ferner einige Tragulidae; auch die ersten Carnivora stellen sich hier ein, Canidae und Felidae. Von europäischen Gattungen finden sich zu dieser Zeit besonders Peratherium, Hyaenodon, Cynodictis, Entelodon, sowie eine vereinzelte Art von Hyopotamus.
Im John Day-Miocän sind Creodonta und Brontotheriinae verschwunden; es herrschen hier unter den Hufthieren die Oreodontidae und Equidae (Anchitherium) vor, unter den Carnivora die Canidae und Nimravinae; einzelne Suidae, Abkömmlinge europäischer Formen, stellen sich ein.
In der Ticholeptus- und Loup Fork-Epoche (Obermiocän und Pliocän) erscheint zum ersten Male Hippotherium und Protohippus, beide ebenso wie die Oreodontidae und Camelidae durch zahlreiche Arten vertreten; Aphelops vertritt die Rhinocerotidae; als Einwanderer aus der alten Welt stellt sich Mastodon ein, dazu Palaeomeryx (= Blastomeryx, Stammform von Antilocapra).
In den Equus- und Megalonyx-beds (Oberpliocän und Diluvium) tritt Equus in zahlreichen Arten zum ersten Male auf neben den letzten Camelidae; zu dieser Zeit erscheinen zahlreiche Einwanderer aus den benachbarten Regionen. Von der alten Welt kommen Ursus und verschiedene Mustelidae, ferner Cervus, Bison und Elephas primigenius; von Südamerika eine Anzahl riesiger Edentata und Hystricomorpha. Dafür sind Oreodontidae, Rhinocerotidae und Hippotherium nicht mehr vorhanden.
Im späteren Diluvium verschwindet der grösste Theil dieser Fauna; die Gattung Mastodon erhält sich bis kurz vor Anbruch der Neuzeit. Die heutige Fauna von Nordamerika ähnelt in bemerkenswerthem Grade der nordeuropäischen; sie enthält fast keine der für das nordamerikanische Tertiär so bezeichnenden und so überaus reich entwickelten Hufthiertypen mehr. Die Perissodactyla sind daselbst vollkommen verschwunden, und mit Ausnahme von Dicotyles und Antilocapra sind die nordamerikanischen Artiodactyla wohl sämmtlich altweltlichen Ursprungs.
Die ältesten Säugethiere, die bisher aus Südamerika bekannt wurden, dürften miocänen, vielleicht oberoligocänen Alters sein; doch ist von den älteren, besonders aus Patagonien stammenden Formen meist noch kaum mehr als der Name bekannt. Uebrigens sind genauere Altersbestimmungen der fossilen Säuger von Südamerika bisher nicht möglich.
Es sind höchst eigenartige, anderen Regionen vollkommen fremde Typen, welche die Fauna von Südamerika bis etwa zum oberen Pliocän hinauf allein zusammenzusetzen scheinen. Die merkwürdigen Toxodontia (incl. Macrauchenia) sind die Vertreter der Hufthiere; neben ihnen stehen eigenthümliche Rodentia, viele von ungeheurer Grösse, den Familien der Caviidae und Chinchillidae verwandt; weitaus die bezeichnendsten Formen sind aber die wunderbaren Edentata, riesenhafte Megatherien und Glyptodonten nebst zahlreichen verwandten Formen; solche Geschöpfe haben sich wohl bis ins Diluvium erhalten, seit dem oberen Pliocän gemischt mit zahlreichen Einwanderern aus Nordamerika, die selbst theilweise altweltlichen Ursprungs waren. Zu dieser Zeit etwa erscheinen nämlich Mastodon, Tapirus, Equus, Dicotyles, Auchenia, Cervus, dazu Ursus, Felis, Machairodus nebst manchen anderen Fremdlingen in Südamerika. Heute sind die auffallendsten Formen der überaus reichen Fauna aus den oberen Pampasablagerungen ausgestorben; Toxodontia sind ganz verschwunden, von Edentata und Rodentia sind nur noch zwerghafte Nachkommen erhalten; die lebenden südamerikanischen Hufthiere, Auchenia, Tapirus, Dicotyles, Cervus sind sämmtlich Nachkommen der fremden Einwanderer, ebenso die meisten Raubthiere und vielleicht auch die Beutelthiere.
Tertiäre Säugethiere sind aus Australien nicht bekannt; doch mögen von den zahlreichen, gewöhnlich als diluvial angesehenen Formen vielleicht doch einige aus dem jüngsten Tertiär stammen. Die diluviale und die mit ihr innig zusammenhängende recente Säugethierfauna von Australien ist ausserordentlich scharf geschieden von der der übrigen Regionen. Australien besitzt nur Marsupialia und Monotremata (abgesehen von kosmopolitischen Gruppen kleiner Säuger wie Chiroptera und Muridae); die Beutelthiere zeigen hier eine erstaunliche Formenmannigfaltigkeit, während diese ganze Thiergruppe in der übrigen Welt unbekannt ist mit Ausnahme von Didelphidae, die wiederum in Australien fehlen. Unter den fossilen Beutlern giebt es eine grössere Anzahl gigantischer Formen, Diprotodon, Nototherium, Halmaturus, Thylacoleo und andere, während die lebenden durchgehends von nicht sehr bedeutender Grösse sind.
Nachstehender Stammbaum ist ein Versuch, die vermuthlichen Verwandtschaftsbeziehungen der einzelnen Säugethiergruppen übersichtlich darzustellen. Die einzelnen Gruppen sind in die Epoche gestellt, in der sie zum ersten Male auftreten.
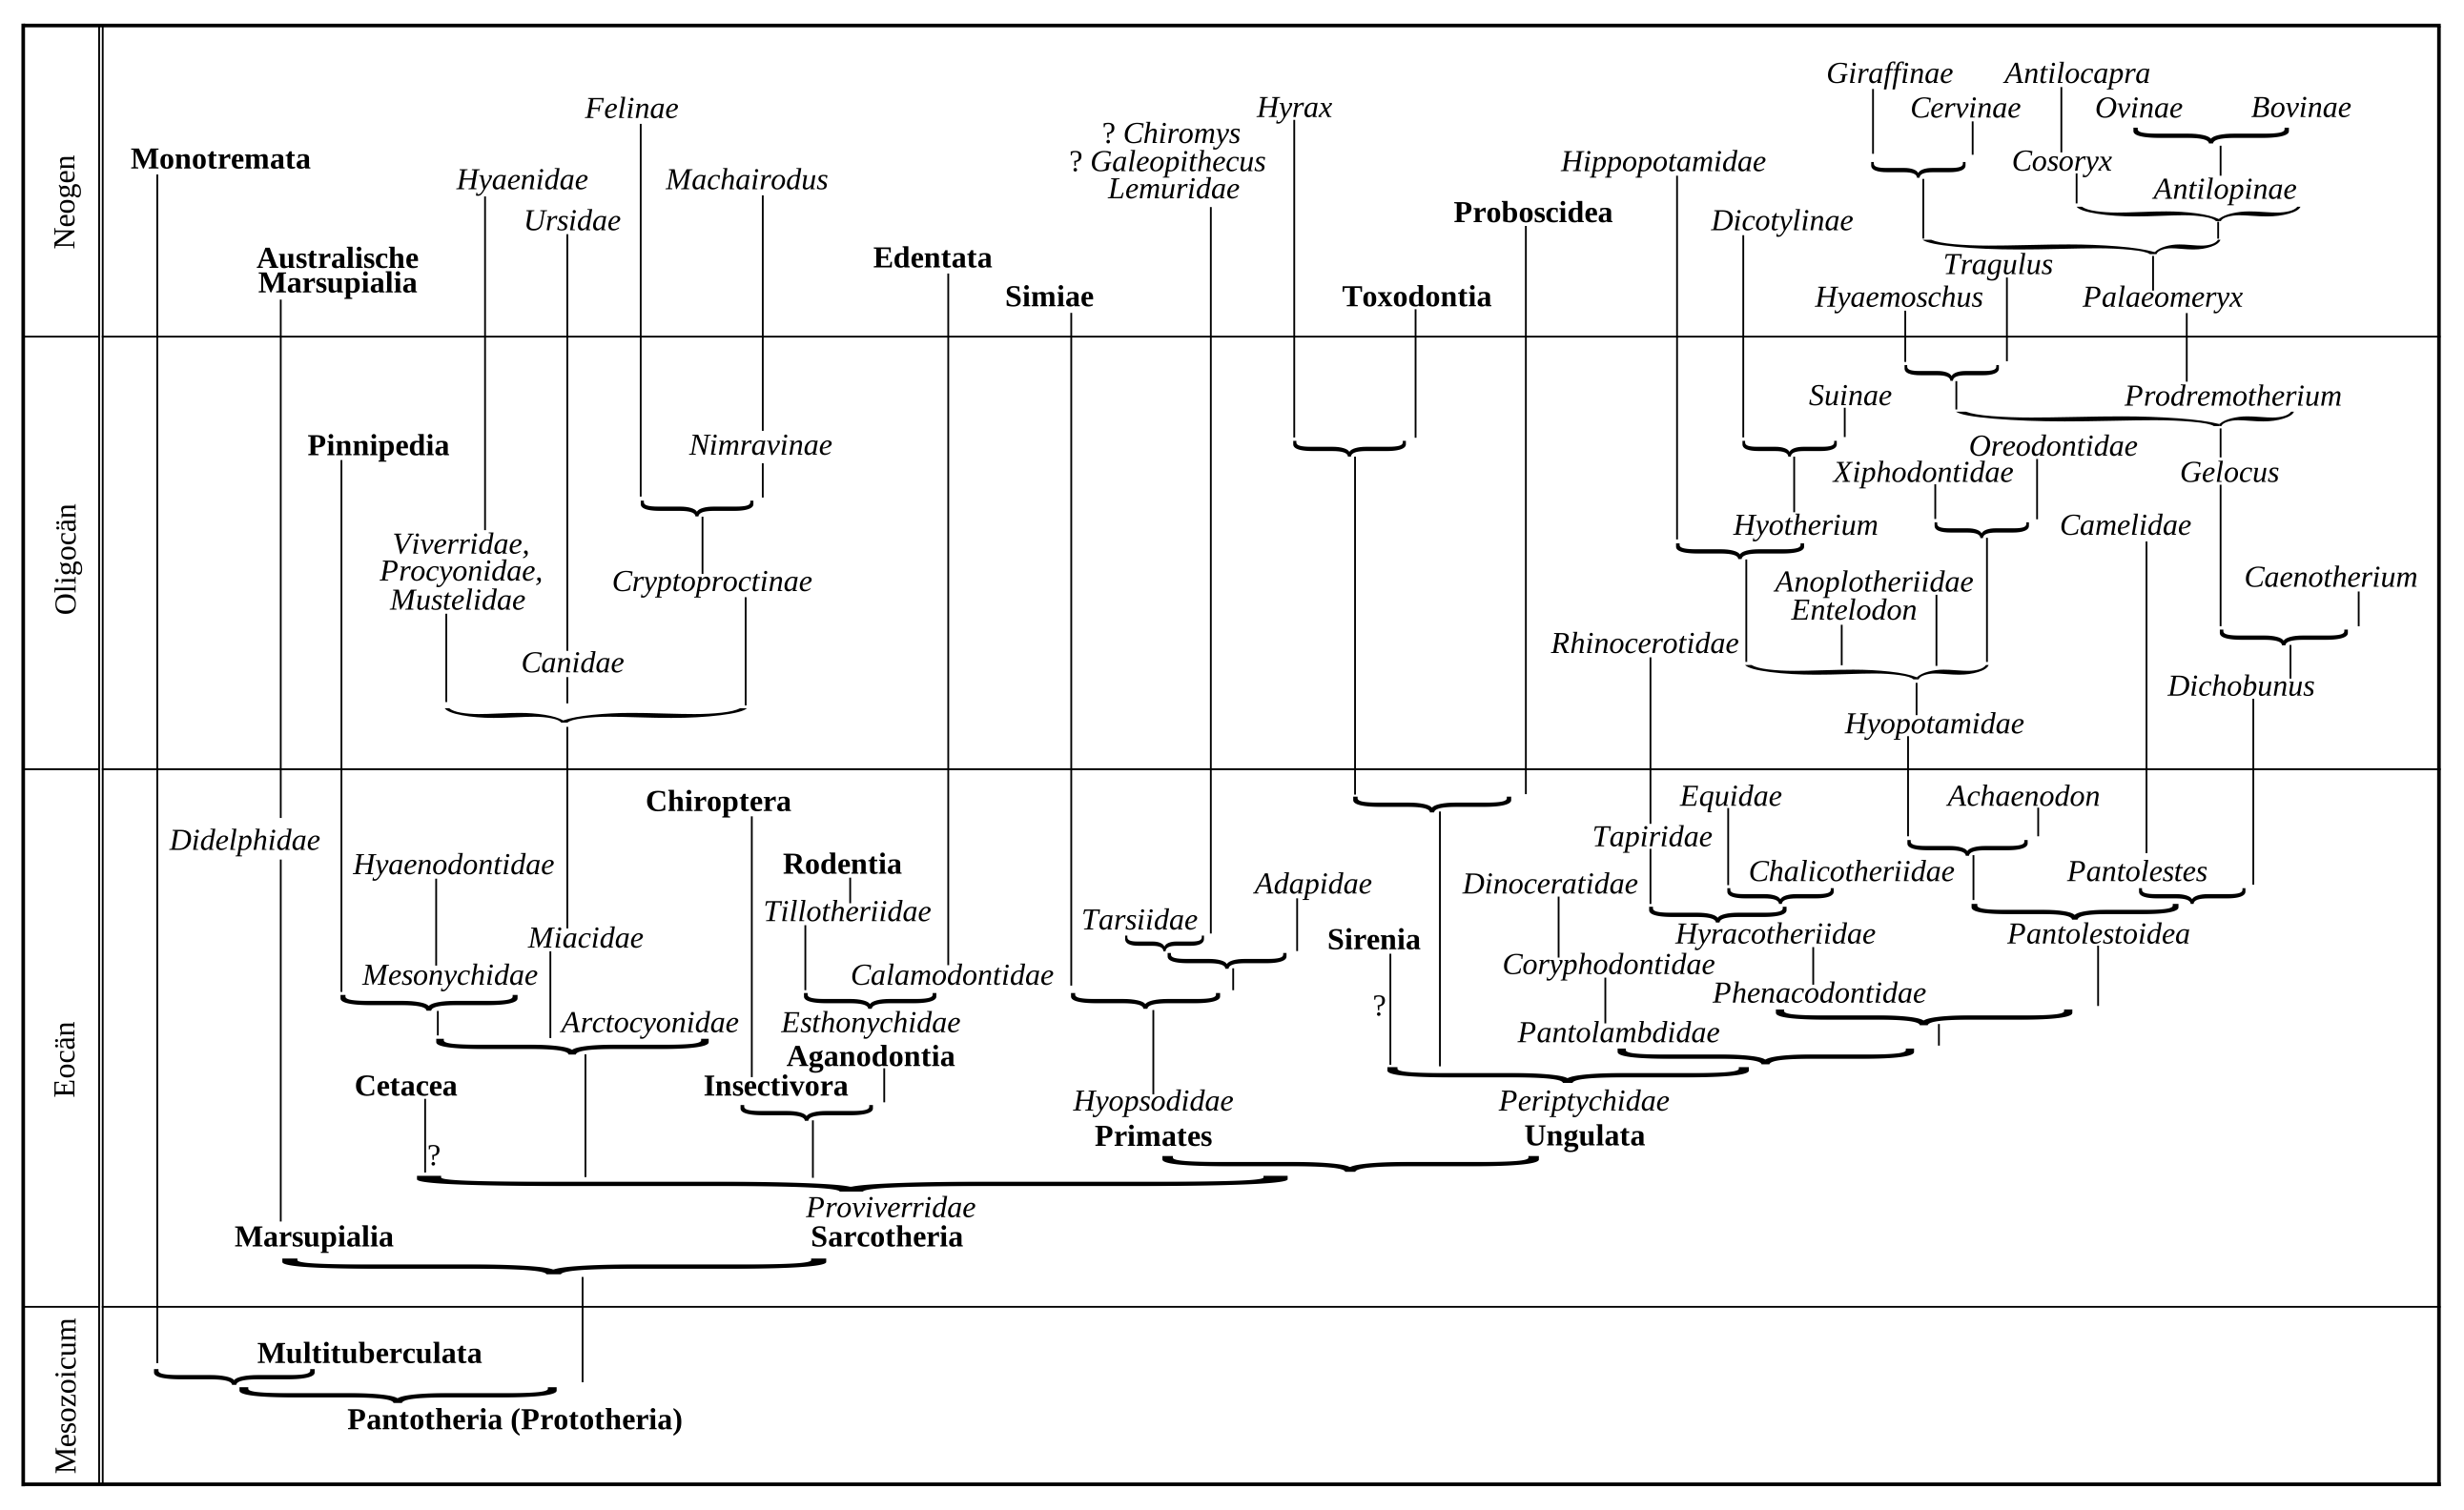
Uebersicht über die geologische Verbreitung der wichtigeren Säugethiergruppen in den verschiedenen Erdtheilen[M].
Meso- zoicumUnter- eocänMittel- eocänOber- eocänOligo- cänMiocänUnter- pliocänOber- pliocänDilu- viumRecent
Monotremata……………………OO
PantotheriaE N
MultituberculataE NE N
Marsupialia excl.……………………OO
Didelphidae………NE NE……SN S
Cetacea………⸻⸻⸻⸻⸻⸻⸻
Sirenia………? E NEEEEN+
Chiroptera………NE NE NE NE NE N S+
Insectivora…ENNE NEEEE NE A I N (S)
Creodonta? NE NE NE NE N
Canidae…………E NE NE NE N SE N S+
Ursidae……………EEE N SE N SE I N S
Viverridae…………EEEE…E I A
Mustelidae…………EEEE N SE N SE I A N S
Hyaenidae………………EEEE I A
Cryptoproctinae…………E NN………A
Nimravinae…………(? E) NN
Machairodinae……………EE NE N SE N S
Felinae……………EE NE N SE N SE A I N S
Pinnipedia……………E N SE NE NE N O+
Tillodontia…NNN
Sciuromorpha……NNE NE NE NE NE NE I A N (S)
Hystricomorpha…………E? S(E N) S(E N) S(E N) S(E I A N) S
Myomorpha…………E NE NE NE NE N S+
Lagomorpha…………NE NE NE NE NE I A N (S)
Edentata……………S(E N) SN SN S(A I) S
Prosimiae…E NE NE NE N…………A I
Simiae……………EEESE I A S
Periptychidae…N? (E)
Phenacodontidae…NN
Hyracoidea………………………E A
Toxodontia……………SSSS
Proboscidea……………E (N)E NE N SE N SA I
Amblypoda…NE NN
Hyracotheriidae……E NN
Tapiridae … … N E N E N E N E N E N N S I S
Rhinocerotidae … … … … E N E N E N E E I A
Chalicotheriidae … … N N E N E N E I I I
Equidae … … … E N E N E N E N E N S E N S E A I
Pantolestidae … … N N
Caenotheriidae … … … … E (E)
Xiphodontidae … … … … E
Anoplotheriidae … … … … E
Hyopotamidae … … … … E N (E) N
Suidae … … … … E (N) E N E N E N E N S E A I N S
Hippopotamidae … … … … … … ? I E I I A
Oreodontidae … … … … N N (? I) N
Camelidae … … … … N N N N I S N S I S
Tragulidae … … … … E N E N E I … I A
Cervidae … … … … … E (N) E (N) E N E N S E I N S
Camelopardalinae … … … … … ? I E I … … A
Bovidae … … … … … E E E (N) E (N) E I A (N)
Vergleichende Uebersicht der wichtigsten Fundorte von fossilen Landsäugethieren.
Südamerika Nordamerika (incl. Mexico) Europa mit Asien (excl. Indien u. China) Afrika Indien Australien
PAMPASFORMATION in Argentinien, Uruguay, Bolivien, Brasilien, Ecuador Höhlen und Torfmoore. DILUVIALE Sande, Kiese, Lehme, Löss; Süsswasserkalke von Cannstatt etc.; Knochenhöhlen; Torfmoore. Algier NARBADDA Höhlen und jüngere Ablagerungen
MEGALONYX-BEDS in den östlichen Staaten und EQUUS-BEDS in den westlichen Staaten (Oregon, Texas, Mexico).
OBERPLIOCÄN: Forest-bed von Norfolk.Tuffe von Perrier etc. (Auvergne); Arnothal (Toskana).Crag von Suffolk; Montpellier und Perpignan; Casino (Italien). UNTERE UND OBERE SIWALIKS Südabhang des Himalaya, China, Japan
LOUP FORKBEDS in Nebraska, Wyoming, Kansas, Neu-Mexico, Texas, Mexico. UNTERPLIOCÄN: Concud (Spanien); Mt. Lébéron (Vaucluse); Eppelsheim (Hessen); Bohnerze von Heudorf und Mösskirch z. Th. (Schwaben); Wiener Becken; Baltavár (Ungarn); Pikermi (Attika); Samos; Marágha (Persien).
? Paraná TICHOLEPTUSBEDS in Nebraska, Montana, Oregon. OBERMIOCÄN: Monte Bamboli (Toskana); Sansan und Simorre (Gers); Sande von Orléans und von Grive St. Alban (Isère); Oeningen (Baden); Steinheim (Württemberg); Georgensgmünd und Günzburg (Bayern); Braunkohlen von Göriach und Eibiswald (Steiermark); Leithakalk bei Wien). ← UNTERE SIWALIKS Südabhang des Himalaya
JOHN DAY-BEDS in Oregon, Washington.
? Patagonien UNTERMIOCÄN: St. Gérand le Puy (Allier); Issoir und Cournon, (Puy de Dôme); Weissenau bei Mainz; Haslach, Eggingen, Eselsberg, Michelsberg bei Ulm.
WHITE RIVER-BEDS in Dakota, Nebraska, Wyoming, Colorado, Assiniboia. Phosphorite von Quercy, Caylux, Mouillac (Südfrankreich)
OBEROLIGOCÄN: Hempstead (Isle of Wight); Sandsteine von Fontainebleau; Ronzon (Haute Loire); Cadibona; (Piemont); Flonheim (Hessen).
UNTEROLIGOCÄN: Hordwell (Hampshire); Bembridge (Isle of Wight); Kalk von Lamandine; Lignite von Debruge (Vaucluse); Gyps vom Montmartre (Paris); Beauchamp (Paris); Bohnerze von Frohnstetten und Sigmaringen (Württemberg), Mauremont z. Th. (Schweiz).
UINTA- oder DIPLACODON-BEDS in Utah.
BRIDGER-BEDS in Wyoming. OBEREOCÄN: Conglomerate von Argenton (Indre) und Issel (Aude); Grobkalk von Paris; Bohnerze von Egerkingen z. Th. (Schweiz); Süsswasserkalk von Buchsweiler (Elsass).
WIND-RIVER und WASATCH-BEDS in Neu-Mexico und Wyoming. MITTELEOCÄN: Londonthon; Lignite von Soissons (Aisne).
PUERCO-BEDS in Neu-Mexico. UNTEREOCÄN: Faune cernaysienne von La Fère (Aisne) und Reims (Marne).
LARAMIE-KREIDE in Wyoming.
ATLANTOSAURUS-BEDS von Wyoming. PURBECK von Dorsetshire.OOLITH von Stonesfield (Oxfordshire).
TRIAS von Nord-Carolina. BONEBED von Württemberg. Basutoland
Vergleichende Uebersicht der tertiären und recenten Säugethierfaunen in den vier Regionen.
Südamerikanische Region Nordamerikanische Region Eurasiatische Region Australische Region
RECENT: Didelphys; Procyonidae, Ursus, Felis; Hystricomorpha; Edentata; Platyrhinae; Tapirus; Dicotyles, Cervinae, Auchenia.Keine Prosimiae, Proboscidea, Bovidae, fast keine Insectivora. RECENT: Didelphys; Talpidae; Canidae, Mustelidae, Procyon, Ursus, Felis; Hystricidae, Castor; Dicotyles, Cervinae, sehr wenige Bovidae (Bison, Antilocapra). Keine Edentata, Primates, Perissodactyla. RECENT: Insectivora; Canis, Ursus, Viverridae, Mustelidae, Felis; Hystrix, Castor; Sus, Cervinae, Bovidae. Keine Marsupialia. RECENT nur in Asien oder Afrika: Hyaena; Edentata; Prosimiae; Catarhinae; Hyrax; Elephas; Tapirus, Rhinoceros, Equus; Hippopotamus, Tragulidae, Camelopardalis. RECENT: Monotremata; Marsupialia; Muridae; Canis.
EQUUS- UND MEGALONYX-BEDS: * Didelphys; Talpidae E; * Canis E, * Ursus E, * † Arctotherium, * Procyon, * Mustelidae E, Felis E, † Machairodus E; * † Hydrochoerus, * † Amblyrhiza; * † Glyptodon, * † Megatherium, * † Mylodon, * † Megalonyx; † Mastodon E (americanus), * † Elephas primigenius E, † Tapirus E, * † Equus E; † Platygonus, Dicotyles, † Camelidae (Holomeniscus, Eschatius), * Cervus E, * Bison E. DILUVIUM von Europa: Canis N, Ursus N, Hyaena, Felis N, † Machairodus N; † Elephas N; † Rhinoceros, * † Elasmotherium, Equus N; Sus, Cervinae, Bison N, Bos, † Ovibos N. FOSSIL: Marsupialia (Dasyurus; Halmaturidae; † Diprotodon; † Nototherium; Phascolomys; † Thylacoleo).
OBERE PAMPASFORMATION: * Canis, * † Arctotherium, * † Machairodus; † Glyptodontidae, Dosypodidae, † Megatheriidae; Caviidae, Chinchillidae; Platyrhinae; † Toxodontia; * † Mastodon; * † Hippidium, * † Equus; * Protauchenia, * Auchenia, * Cervinae.
OBERPLIOCÄN: * Canis N, † Hyaenarctos, * Ursus N, Hyaena, Felis N, Machairodus N, * Lepus N; Cynopithecidae; † Mastodon N (arvernensis), * Elephas N; Tapirus N, Rhinoceros, * Equus N; † Hippotherium N; Sus, * Hippopotamus, Cervus N, Antilopinae, Bovinae.
LOUP FORK-BEDS: Canidae, *Machairodus E; * Hystricidae; Palaeolagus; * Edentata (Morotherium); Mastodon E; Tapiravus, † Rhinocerotidae (Aphelops), † Hippotherium E; † Protohippus, * † Hippidium; † Oreodontidae, Camelidae, † Blastomeryx, * † Cosoryx, * Dicotyles. UNTERPLIOCÄN: Hyaenarctos, Mustelidae, Ictitherium, * Hyaena, Machairodus N; Hystrix; Mesopithecus; † Dinotherium, Mastodon N, Rhinoceros, Chalicotherium, * Hippotherium N; Sus, Cervus N, Giraffinae, Antilopinae.
ÄLTERE ABLAGERUNGEN: ? Procyonidae; Hystricomorpha (Hydrochoerus, Lagostomus, Megamys); Glyptodontinae, Dasypodidae, Megatheriidae; Toxodontia.|?↓
TICHOLEPTUS-BEDS: * Proboscidea E (Mastodon proavus); † Anchitherium E, * Equinae (Hippotherium E, Protohippus); * Dicotyles, Oreodontidae (5 Gattungen), * Protolabis, * Blastomeryx (= Palaeomeryx E). OBERMIOCÄN: † Amphicyon, * Ursidae (Hyaenarctos), * Felis N, * Machairodus N; * Simiidae (Dryopithecus, Pliopithecus); * Proboscidea (Dinotherium, Mastodon N); * Tapirus N, Aceratherium N, * Rhinoceros, Chalicotherium, * † Anchitherium N; † Cebochoerus, † Hyotherium, * Sus, * Listriodon, * Hyaemoschus, Palaeomeryx N (gehörnt), * Cervus N, * Bovidae (Antilope).
JOHN DAY-BEDS: Canidae (Temnocyon vgl. Cynodictis E, u. a.), † Cryptoproctinae (Archaelurus E, Dinictis), † Nimravinae (Pogonodon, Hoplophoneus); Castor E, * Lepus E; Diceratherium, * Anchitherium E, Anchippus; † Entelodon E, Bothrolabis, Merycochoerus, Eucrotaphus, Gomphotherium, † Tragulidae.
UNTERMIOCÄN: † Peratherium N; Talpa; * Amphicyon, Cephalogale, Amphictis; † Theridomys, * Castoridae N (Steneofiber), * Lagomyidae (Titanomys); † Protapirus, Aceratherium N, Chalicotherium; † Caenotherium, † Anthracotherium, Hyotherium N, * Cervidae (Palaeomeryx, hornlos).
WHITE RIVER-BEDS: * Peratherium E; † Creodonta (Hyaenodon E); † Ictopsidae; * Carnivora (Amphicyon = ? Cynodictis E, Dinictis, Hoplophoneus); † Prosimiae; *Castor E, * Sciurus E, * Muridae, * Palaeolagus; *Tapiravus, * † Hyracodon, † Amynodon, * Caenopus E, *† Menodus, † Symborodon, Meschippus; Hypotamus E, *Entelodon E, *Suidae (? Hyotherium E), Agriochoerus, Oreodon, Merycochoerus, * † Poibrotherium, Leptomeryx. OBEROLIGOCÄN: Peratherium N; † Creodonta (Hyaenodon N); Cynodon N, Mustelidae, * Aelurogale N; † Pseudosciurus, Theridomys, † Archaeomys, * Cricetodon; * Rhinocerotidae (Ronzotherium N), † Palaeotherium, † Paloplotherium; Caenotherium, Anthracotherium, † Hyopotamus N, † Entelodon N, * Hyotherium N, * Ruminantia (Gelocus, Prodremotherium).
Anmerkung. Ein vor einem Namen stehendes * oder † bedeutet, dass diese Formen während der betreffenden Epoche zum ersten Male (*) oder zum letzten Male (†) in der gleichen Region auftreten.Ein hinter einem Gattungsnamen stehendes E, bez. N bedeutet, dass die gleiche oder eine kaum davon zu trennende Gattung auch in Europa (E), bez. Nordamerika (N) bekannt ist [nicht für Südamerika und nicht für recente Formen angewendet].Fett gedruckt sind die Namen von Gattungen, welche ganz besonders bezeichnend und häufig sind während der betreffenden Epoche. UNTEROLIGOCÄN: * Peratherium N; Insectivora; Chiroptera; Cynohyaenodon, Hyaenodon N, Pterodon; * Carnivora (Cynodictis N, Viverra); * Rodentia (Plesiarctomys N, Pseudosciurus, Sciurus, Theridomys); † Prosimiae (Adapis, Necrolemur); † Lophiodon, † Pachynolophus, * Palaeotherium, * Paloplotherium, Anchilophus; * Artiodactyla (Dichobunus, Caenotherium, Cebochoerus, Choeropotamus, Xiphodon, Anoplotherium).
UINTA-BEDS: † Mesonyx; † Plesiarctomys; † Hyrachyus, Amynodon, * † Diplacodon, Epihippus; * Oreodontidae (Protoreodon), * Camelidae (Leptotragulus).
BRIDGER-BEDS: Chiroptera; Ictopsidae; Creodonta; † Tillodontia; Plesiarctomys E; Prosimiae; * † Dinocerata; Helaletes,† Hyracotherium E, * Hyrachyus E, * Amynodon, * † Palaeosyops; * † Achaenodon, † Pantolestes. OBEREOCÄN: Creodonta; Prosimiae; Perissodactyla (* Lophiodon, * Pachynolophus, Hyrachyus N).
WASATCH-BEDS: Ictopsidae; * Mesonyx, Stipolophus, Oxyaena E, Didymictis; Esthonyx, Calamodon; * Rodentia (Plesiarctomys E; Hyopsodus, Pelycodus, Anaptomorphus; † Phenacodus; * † Coryphodontidae E; * Perissodactyla (Systemodon, Hyracotherium E, Ectocyon); * Artiodactyla (Pantolestes). MITTELEOCÄN: Creodonta (Palaeonictis); * † Coryphodon N; * Perissodactyla (Hyracotherium N).
PUERCO-BEDS: † Multituberculata (Ptilodus, Neoplagiaulax E, Polymastodon); Psittacotherium; Creodonta (Mioclaenus, Chriacus, Deltatherium, Didymictis); Prosimiae; † Periptychidae (Haploconus, Periptychus), * Phenacodontidae († Protogonia); * Amblypoda († Pantolambda). UNTEREOCÄN: † Multituberculata (Neoplagiaulax N, Liotomus); Adapisorex; Arctocyon; Plesiadapis.
Berichtigungen und Druckfehler.
S. 36 Z. 11 v. u. statt Fig. 22 G, m lies: »Fig. 23 G, m«.
S. 37 Z. 9 v. o. statt Fig. 23 d lies: »Fig. 22 d«.
S. 53 Z. 1 v. u. statt gothlandicum lies: »Gothlandicum«.
S. 83 Z. 16 v. o. statt eifeliensis lies: »Eifeliensis«.
S. 104 Z. 18 v. o. statt europaeum lies: »Europaeum«.
S. 126 Z. 21 v. o. statt Gf. lies: »Schl. sp.«.
S. 136 Z. 4 v. u. statt vorn lies: »hinten«.
S. 142 Fig. 142 Z. 1 v. o. statt Ophioceramis lies: »Ophiocten« und statt ferruginea lies: »ferrugineum«.
S. 144 Z. 22 v. o. und Z. 5 v. u. statt Ophioceramis lies: »Ophiocten«.
S. 144 Z. 7 v. u. statt ferruginea lies: »ferrugineum«.
S. 145 Fig. 147 Z. 1 v. o. statt Ophioceramis lies: »Ophiocten« und statt ferruginea lies: »ferrugineum«.
S. 265. Fam. Unionidae. Das Schloss und die Schalenverzierungen mancher Arten dieser Familie zeigen so grosse Uebereinstimmung mit den entsprechenden Bildungen von Trigonia, dass man die Unionidae mit Neumayr als Trigonien betrachten muss, welche durch Anpassung an den Aufenthalt im Süsswasser die unterscheidenden Merkmale (Reduction des Schlosses, Ausdehnung des Ligamentes nach vorn etc.) erlangt haben. Diese Umwandlung der Trigonien zu Unionen scheint aber nicht nur einmal, sondern zu wiederholten Malen und bei verschiedenen Gruppen der Trigonien Platz gegriffen zu haben, da sich nach der Gestalt und Verzierung der Schale gewisse Unionen auf bestimmte Gruppen von Trigonien zurückführen lassen.
S. 281 Z. 16 v. u. statt Ldb. lies: »Sdb.«.
S. 289 Z. 8 v. u. statt Jura lies: »Trias«.
S. 289. Pl. intusstriata Emmr. Rhät. Nord- und Südalpen.
S. 356 Z. 7 v. u. statt gebogen lies: »gebogenen«.
S. 356 Z. 6 v. u. statt Rückseite lies: »Rückenseite«.
S. 363 Z. 1 v. u. statt der nun lies: »der einzelnen, nun«.
S. 364 Z. 6 v. o. statt Seltener lies: »Selten«.
S. 366 Z. 4 v. o. statt 432 lies: »423«.
S. 366 Z. 2 v. u. statt Nahtumschlage lies: »Septalumschlage«.
S. 385 Z. 17 v. u. statt Hohlkiel lies: »Hohlkiel (Septalkiel)«.
S. 385 Z. 20 v. u. statt voll lies: »voll (Schalenkiel)«.
S. 388 Z. 14 v. u. statt 467 lies: »468«.
S. 388 Z. 11 v. u. statt 468 lies: »467«.
S. 391 Z. 23 v. o. statt Aussensattel lies: »Aussenlobus«.
S. 393 Z. 2 v. o. statt sind lies: »ist«.
S. 412 Z. 10 v. u. statt Mittelsattel lies: »Mittel- bez. Aussensattel«.
S. 416 Z. 2 v. o. statt (Fig. 502) lies: »—«.
S. 423 Z. 5 v. u. statt B. lies: »B. (Ptychoceras)«.
S. 429 Z. 9 v. u. statt oft lies: »erst«.
S. 430 Z. 4 v. o. statt 521 lies: »520«.
S. 430 Z. 9 v. o. statt 522 lies: »521«.
S. 448 Z. 6 v. o. statt Neum. lies: »d’Orb.«.
S. 455 Z. 2 v. u. statt Octopodidae lies: »Octopidae«.
S. 459 Z. 6 v. o. statt Octopoden lies: »Octopidae«.
S. 463 Z. 3 v. u. statt 556 lies: »556 B, C«.
S. 509 Z. 16 v. o. statt Cyprina lies: »Cypris«.
Zu S. 517 u. ff. Eine strenge Trennung der »Chordascheide« von den »Wirbelbögen« ist besonders bei höheren Wirbelthieren nicht durchzuführen. Die Definition von »Wirbelcentrum« würde daher besser dahin lauten, dass darunter alle diejenigen central gelegenen Theile des Wirbelkörpers zu verstehen sind, welche selbständig und nicht von den Bogentheilen aus ossificiren.
S. 530. Zwischen Z. 10 u. 11 v. u. ist als Ueberschrift einzufügen: »Hautgebilde der Fische«.
S. 617 Z. 18 v. u. Bei den primitivsten Formen ist das proximale Rippenende sehr verbreitert, aber nicht oder nur undeutlich getheilt.
S. 633 Z. 13 v. o. statt eine Form lies: »zwei verschiedene Formen«.
S. 645 Z. 13 v. o. statt Nordamerika lies: »Nord- und Südamerika«.
S. 651 Z. 2 v. o. Nach »Kreide« füge ein: »(Pteranodon-beds)«.
S. 655 Z. 12 v. o. statt Jura und Kreide lies: »dem Jura«.
S. 671 Z. 8 v. u. Vor »Einzige« füge ein: »Den lebenden Pinguinen sehr ähnlich«.
S. 730 Z. 10 v. u. füge bei: »Puerco- bis Wasatch-Eocän«.
S. 774 Z. 10 v. o. statt G. velaunum lies: »R. velaunum«.
S. 792 Z. 8 v. o. lies: »Anthracotheriidae = Hyopotamidae«.
S. 795 Fig. 1007 lies: »Obere Backzähne der rechten Seite«.