II. Abschnitt. Mikroskopische Anatomie und spezielle Technik.
Reading edition
Alle Tierkörper entstehen durch einen sehr komplizierten Entwicklungsvorgang aus dem Ei, das ein in sich einheitliches Gebilde darstellt; es bildet sich im Beginne der Entwicklung in rascher Folge zu einem zusammengesetzten Gebilde um, dessen einzelne Teile in vieler Beziehung das Aussehen des Eies nachahmen, sich nur durch die mit dem Fortschreiten der Entwicklung abnehmende Größe von diesem unterscheiden. Durch die Entwicklung ist also aus dem zuerst einheitlichen Ei eine Vielheit von Einheiten geworden; diese Einheiten nennen wir — unabhängig von der Frage ihres Zusammenhanges untereinander — Zellen (aus der Eizelle sind also durch die ersten Entwicklungsvorgänge zahlreiche unter sich gleiche Zellen entstanden). Im Verlaufe der Entwicklung ordnen sich die Zellen zu Keimblättern, das sind Zellenkomplexe, die bei niederen Wirbeltieren eine Zeitlang in einfacher Schicht angeordnet sind.
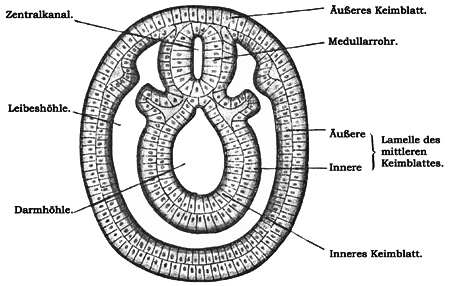
Fig. 2.
Schematischer Durchschnitt durch den Leib eines Wirbeltierembryo. Die freien Seiten der Zellen sind durch dunklere Abtönung markiert.
Wir nennen so angeordnete Zellenkomplexe Epithelien, d. h. zusammenhängende Lagen von Zellen, welche äußere und innere Flächen des Körpers bedecken; alle Zellen sind zu dieser Zeit Epithelzellen, an denen man freie, der Oberfläche zugekehrte und basale Flächen unterscheiden kann (Fig. 2).
In dieser Entwicklungsstufe gleichen sich die Zellen nicht mehr völlig; sie sind aus dem vorher indifferenten Zustand differenziert worden.
Sehr bald entstehen auch Zwischenräume zwischen den Epithelien und werden mit Zellkomplexen angefüllt, deren Differenzierung nach den verschiedensten Richtungen weiter fortschreitet. Komplexe von gleichartig differenzierten Zellen bezeichnen wir als Gewebe.
Wir unterscheiden vier Hauptgewebe: 1. Das Epithelgewebe, 2. das Gewebe der Stützsubstanz, 3. das Muskelgewebe, 4. das Nervengewebe. Solange diese Gewebe noch jung sind, bestehen sie nur aus gleichartigen Elementen, nur aus Zellen; im Verlauf der Entwicklung aber wird dieses Verhältnis in zweifacher Weise abgeändert. Erstens produzieren die Zellen besondere Substanzen, welche, zwischen Zellen gelagert, Interzellularsubstanzen genannt werden. Dadurch wird indessen der Charakter der Gewebe nicht wesentlich alteriert, die oben angegebene Definition von „Gewebe“ muß nur dahin erweitert werden, daß wir ein Gewebe einen Komplex gleichartig differenzierter Zellen und ihrer Abkömmlinge nennen. Eingreifender ist die zweite Abänderung, die darin besteht, daß die Gewebe der einen Art in andere Gewebe eindringen; dies ist nun in sehr verschiedenem Grade der Fall, am reinsten hat sich noch das Epithelgewebe erhalten, ihm folgt das Stützgewebe. Muskelgewebe aber und Nervengewebe sind im ausgebildeten Zustande mit anderen Geweben so stark durchmischt, daß, wenn auch in ihnen die zu Muskeln, bzw. zu Nerven differenzierten Elemente vorherrschen, von einem Gewebe im Sinne der gegebenen Definition doch kaum mehr die Rede sein kann.
Aus diesem Grunde ist auch der Vorschlag gemacht worden, von einer Einteilung in Gewebe Abstand zu nehmen und nur Elemente und Organe zu unterscheiden.
Die Gewebe sind also unter sich nicht gleichwertig; am niedersten stehen das Epithelgewebe und das Stützgewebe; beide, sowohl hinsichtlich ihrer Gestalt, als auch ihrer Leistung voneinander verschieden, kommen auch im Pflanzenreiche vor; wir können sie deshalb als vegetative Gewebe zusammenfassen. Höher, sowohl in morphologischer, wie in physiologischer Hinsicht, stehen das Muskel- und das Nervengewebe, die, nur dem tierischen Körper zu eigen, animale Gewebe genannt werden.
Es wäre verfehlt, aus der Tatsache, daß die Gewebe von den epithelialen Keimblättern abstammen, schließen zu wollen, daß nach erfolgter Differenzierung der Hauptgewebe aus dem fertigen Epithelgewebe etwa Stütz- oder Muskel- oder Nervengewebe entstehen könne. Jedes Hauptgewebe liefert dann nur seinesgleichen.
Indem verschiedene Gewebe zum Aufbau eines Körpers von bestimmter innerer Struktur und bestimmter äußerer Form zusammentreten, bilden sie ein Organ.
Die Erforschung der Zellen und der Gewebe fällt der Gewebelehre, der Histologie, anheim. Die Gewebelehre ist ein Teil der feineren Anatomie, die nach dem Hilfsmittel, dessen sie sich zumeist bedient, mikroskopische Anatomie benannt wird; auch die Erforschung der Organe, soweit dieselbe durch das Mikroskop vermittelt werden kann, ist Aufgabe der mikroskopischen Anatomie.
I. Histologie[38].
A. Die Eizelle.
Unter Zelle (Cytos[39], Cellula) versteht man ein räumlich begrenztes Formelement, welches unter gewissen Bedingungen fähig ist, sich zu ernähren, zu wachsen, sich fortzupflanzen und auf äußere Reize zu reagieren. Wegen dieser Fähigkeiten führt die Zelle den Namen „Elementarorganismus“.
Die Eizelle, als Entstehungsform jedes tierischen Organismus, zeigt die wichtigsten Eigenschaften jeder Zelle. Bevor die Eizelle ihrer Bestimmung gerecht werden kann, liegt sie, von anderen Zellen umgeben, im Eierstock (Ovarium; s. darüber unter Geschlechtsorgane). Frisch aus einem reifen Ovarialfollikel isoliert (s. Techn. Nr. 1, S. 71) ist die Eizelle der Säugetiere, auch des Menschen, ein kugliges Gebilde, von 0,06-0,25 mm Durchmesser. Die menschliche Eizelle besitzt gewöhnlich einen Durchmesser von 0,25 mm; man kann sie also gut mit bloßem Auge erkennen. Damit übertrifft sie die Mehrzahl der Körperzellen an Masse.
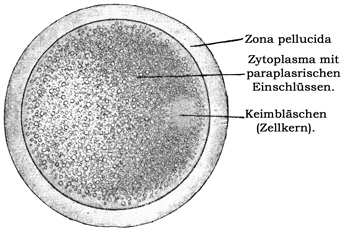
Fig. 3.
Eizelle aus einem Ovarialfollikel der Kuh. 250mal vergrößert. Technik Nr. 1, S. 71.
Die Eisubstanz ist im ganzen durchsichtig, aber nicht klar; sie enthält in großer Zahl kleinere und umfangreichere, meist kuglige Einschlüsse, die die Durchsichtigkeit stören (s. Fig. 3). Diese Einschlüsse werden unter der Bezeichnung „Dotter“ zusammengefaßt. Nur dicht unter der Oberfläche und an einer bestimmten Stelle im Innern ist der Dotter spärlicher zu finden.
Die Eizelle der Säugetiere ist von einer breiten glasklaren Hülle umgeben, der Zona pellucida[40].
Diese besitzt feine Porenkanäle, durch die Nährmaterial aus der Umgebung der Eizelle eindringen kann.
Nicht ganz zentral in der eben erwähnten dotterärmeren Masse der Eizelle liegt ein scharf begrenztes, hell durchscheinendes Bläschen, früher als „Keimbläschen“ bezeichnet (s. Fig. 3); es ist der Zellkern (Nucleus, Karyon[41]). In ihm tritt manchmal ein noch kleineres Kügelchen etwas dunkler hervor, der Nucleolus („Keimfleck“).
Der Zellkern ist in allen Eizellen und in fast allen Körperzellen ein wichtiger Formbestandteil. Die gesamte übrige Zellmasse nennen wir Zytoplasma[42]. Dieses zeigt schon bei den Eizellen in seiner Zusammensetzung eine große Mannigfaltigkeit, so daß es notwendig ist, zunächst rein begrifflich mehrere Gruppen von zytoplasmatischen Elementen zu sondern. In der Voraussetzung, daß die Lebenstätigkeit in einer fortwährenden Assimilation und Dissimilation besteht, daß also fortwährend Substanzen irgendwelcher Art auf- und abgebaut werden, lassen sich Teile des Zytoplasmas unterscheiden, die aktiv an diesen Vorgängen beteiligt sind, und solche, die entweder Objekt oder Produkt dieser Vorgänge sind.
Die Gesamtheit der Inhaltsmassen, die aktiv, als dauernder Bestandteil des Zytoplasmas an dem Lebensprozeß beteiligt sind, nennen wir Protoplasma[43], die Gesamtheit der Objekte und Produkte des Stoffwechsels soweit sie nur vorübergehend in der Zelle vorkommen, bezeichnen wir als paraplasmatische Stoffe[44]. Solche sind z. B. alle deutlich die Rolle von Nahrungsstoffen spielenden Einschlüsse, wie Eiweiß, Glykogen, Fette usw., ferner zur Ausscheidung bestimmte Stoffwechselprodukte, die häufig längere Zeit im Zytoplasma angesammelt werden.
Endlich sehen wir, daß durch die Tätigkeit des Protoplasmas gewisse Substanzen im Zelleib oder an der Oberfläche der Zellen entstehen, die wir dann nicht mehr eigentlich zum lebenden Teil des Zellkörpers rechnen, wohl aber als Dauereinrichtung der Zelle eine wichtige Rolle spielen sehen; solche Strukturen charakterisieren die mannigfaltigen Zellformen, die wir im Lauf der nächsten Kapitel kennen lernen werden in hohem Maße. Sie fassen wir in dem Begriffe Metaplasma[45] zusammen.
Protoplasma und Metaplasma also sind dauernde Zellbestandteile, während das Paraplasma als Objekt und Produkt der Zelltätigkeit eine dem Wechsel unterworfene Einrichtung darstellt.
Es gehört zu den schwierigsten Aufgaben der Zellenforschung, aufgefundene Strukturelemente in eine dieser drei begrifflich unterschiedenen Gruppen einzuordnen. Hierin gehen deshalb die Meinungen oft sehr stark auseinander.
Im Zytoplasma der Eizelle finden wir folgende paraplasmatischen Stoffe:
a) die Dotterkörner. Ihre Menge bestimmt bei den verschiedenen Tierarten im wesentlichen die Größe der Eizellen; so beruht die Größe des Vogeleies auf der sehr starken Dotteransammlung im Zytoplasma, während das kleine Säugetierei sehr dotterarm ist. Das Vogelei muß Nahrung für die ganze Bebrütungszeit in sich enthalten, der Säugetierkeim findet im mütterlichen Uterus sehr bald eine Nahrungsquelle und kann so der starken Dotterbelastung des Zytoplasmas entraten. Die Dotterkörner sind demnach Objekte des Stoffwechsels und als solche paraplasmatisch.
Sie bestehen aus einem Eisen und Phosphor enthaltenden komplizierten Eiweißlipoidgemisch und sind oft mit bestimmten Farben ausgestattet. In der frischen Säugetiereizelle erscheinen sie als ziemlich stark lichtbrechende, verschieden große rundliche Körper. Bei Amphibieneiern formen sie sich zu größeren, sog. Dotterplättchen (s. Fig. 4), beim Vogelei nehmen sie Tropfenform an.
b) Fett. Dieses ist meist in der Form feinster Tröpfchen im Zytoplasma verteilt, und zeichnet sich durch bestimmte Reaktionen aus (s. b. Fettgewebe, S. 71).
Als ein Beispiel metaplasmatischer Bildungen sind die Pigmentkörnchen zu betrachten, die der Säugetiereizelle zwar fehlen, aber bei solchen Tierformen sehr verbreitet sind, deren Eier sich freilebend im Wasser entwickeln. Sie sammeln sich z. B. beim Froschei vorzugsweise an der Oberfläche des Zytoplasmas an (s. Fig. 4) und sind hier als Schutz gegen zu starke Lichtwirkungen zu betrachten (s. a. unter Pigment, S. 103). Die Pigmentkörnchen sind sicher durch die Tätigkeit des Protoplasmas entstanden, besitzen aber kaum eine selbständige Stoffwechseltätigkeit; anderseits sind sie aber eine für die Zelle notwendige Einrichtung überall dort, wo sie angetroffen werden, also ein nicht lebender Baubestandteil, daher seine Einordnung bei dem Begriff Metaplasma.
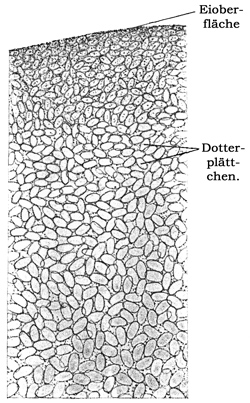
Fig. 4.
Aus einem Durchschnitt durch ein Froschei. 500mal vergrößert. Nächst der Eioberfläche dichte Lagerung der hier dunkel gezeichneten Pigmentkörnchen (metaplasmatische Bildungen). Die (paraplasmatischen) Dotterplättchen füllen den größten Raum im Zytoplasma aus. Technik Nr. 2, S. 71. Nahe der Eioberfläche scheinen Pigmentkörnchen auch in den Dotterplättchen zu liegen, in Wirklichkeit liegen sie auf deren Oberfläche, also in dem zwischen den Dotterplättchen vorhandenen Zytoplasma.
Falls die Zona pellucida (s. o.) von der Eizelle gebildet wird (sie könnte auch von den bei der Eizellenentwicklung dicht anliegenden Follikelzellen geformt sein), so muß sie dem Metaplasma zugerechnet werden.
Schwierig ist zurzeit besonders die Beurteilung einer anderen Art von Einschlüssen des Zytoplasmas, die unter der Bezeichnung Plastosomen[46] als regelmäßige Inhaltskörper der Eizelle wie der meisten Körperzellen erkannt sind. Sie lassen sich in der unfixierten Eizelle nicht erkennen, dagegen mit besonderen Färbemethoden aus der Fülle andersartiger Zelleinschlüsse hervorheben (Fig. 5). Während einige Forscher diese Plastosomen als einen wesentlichen formbildenden, also protoplasmatischen Bestandteil des Zytoplasmas bezeichnen, werden sie von anderen als hauptsächlich aus Eiweiß bestehende, also paraplastische Reservestoffe aufgefaßt, auf deren Kosten sich im Zytoplasma die verschiedensten Einschlüsse bilden können. Wenn wir auch der letzteren Ansicht den Vorzug geben, so verkennen wir nicht, daß diese Substanzen von besonderer Bedeutung für viele Bildungsvorgänge im Zellkörper sind, und werden deshalb auf sie bei vielen Gelegenheiten hinweisen müssen. Ihre Form ist sehr wechselnd, bald treten sie als Körner, bald als Fäden auf, endlich können sie aus Körnern zusammengesetzte Ketten bilden.
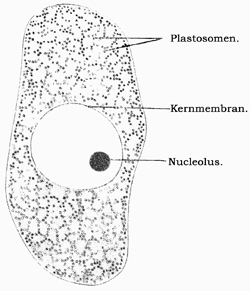
Fig. 5.
Schnitt durch ein Wurmei (Filaria papillosa) nach Meves (1915). Sehr stark vergrößert. Feinkörnige Plastosomen (schwarz). Im Kern nur der Nucleolus gefärbt. Technik Nr. 3, S. 72.
Die hier als Plastosomen bezeichneten Gebilde sind morphologisch identisch mit den Mitochondrien[47], Chondriosomen[48], Chondriomiten[49] (Benda, Meves, Duesberg) zum Teil mit der Filarmasse (Flemming), den Bioblasten[50] (Altmann), den Plasmosomen[51] (Arnold). Ihre morphologische Darstellung beruht teilweise auf Untersuchungen an überlebenden Zellen, teilweise auf komplizierten Färbemethoden, mit denen es gelingt, sie in überzeugender Weise sichtbar zu machen. Ihre physiologische und histogenetische Bedeutung ist noch lebhaft umstritten. Wegen Einzelheiten sei besonders verwiesen auf Duesberg (Ergebn. d. Anat. u. Entwicklungsgesch. Bd. XX) und A. Meyer, Analyse der Zelle, Jena 1920, der sie als Allinante bezeichnet.
Außer diesen ziemlich gleichmäßig im Zytoplasma verteilten Inhaltskörpern kommt in noch wachsenden Eizellen ein eigenartiger Substanzkomplex vor, den man als Balbianischen Dotterkern bezeichnet; in ihm müssen wir die Überreste einer bei den meisten Zellen sehr wichtigen Einrichtung erkennen, die wir als Zentralapparat bei den Teilungsvorgängen genauer besprechen werden.
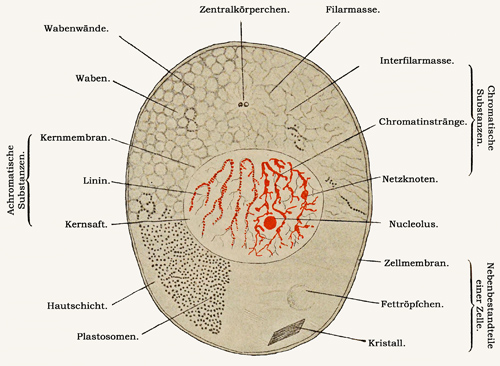
Fig. 6.
Schema der Zelle. Im oberen Quadranten links ist eine schaumige, nebenan rechts eine fädige Struktur des Protoplasmas eingezeichnet. Die Figur soll die häufiger vorkommenden Zellstrukturen rein schematisch erläutern.
Alle bisher besprochenen Gebilde und der Zellkern werden von einer Grundmasse zusammengefaßt, die wir für die wesentlichen aktiven Leistungen des Zelleibes verantwortlich machen. Diese Masse ist das Protoplasma (auch Bildungsplasma genannt). Seine Zusammensetzung ist noch in tiefes Dunkel gehüllt. Es ist eine alkalisch reagierende, weiche zähflüssige Substanz, die in Wasser unlöslich, leicht quellungsfähig, hauptsächlich aus Eiweißkörpern, viel Wasser und Salzen besteht und einen besonderen N-haltigen Körper, das Plastin enthält. In den primitiven Zellen, zu denen wir vor allem die Eizellen und die Zellen aus den jüngsten Entwicklungsstufen der Organismen rechnen, ist eine Struktur in diesem Bildungsplasma nicht zu erkennen. Experimentelle Untersuchungen[52] haben nachgewiesen, daß dies primitive Protoplasma alle wesentlichen Eigenschaften einer emulsionsartigen Flüssigkeit besitzt, was das Bestehen festerer Strukturen ausschließt. In Eizellen läßt sich z. B. der Inhalt vollständig durcheinandermischen, ohne daß die wichtigste Eigenschaft, die Formbildung, wesentlich gestört würde. Wie wir in jeder Emulsion mindestens zwei Phasen unterscheiden, das Lösungsmittel und die tropfig gestaltete emulgierte Phase, so wird eine ähnliche, wenn auch viel kompliziertere Zusammensetzung auch für das Protoplasma anzunehmen sein. Erst durch eine lokale Konzentrationserhöhung wird es zu einer teilweise festeren Konsistenz des Protoplasmas und damit zur Bildung ultramikroskopischer und mikroskopisch sichtbarer Strukturen kommen, die wir somit als eine sekundäre Umbildung aus dem primitiven Zustand betrachten. Hierher gehört die Schaumstruktur des Protoplasmas, die Buetschli an vielen Objekten nachgewiesen hat, hierher die Filarstrukturen Flemmings und viele später zu erwähnende morphologische Differenzierungen im Zellinnern. Alle diese Bildungen sind den primitiven Zellen wahrscheinlich fremd, gehören also nicht zu den unbedingt notwendigen Eigenschaften des aktiven Protoplasmas.
Daß in dieser morphologisch kaum faßbaren Substanz die wichtigsten Lebensvorgänge ablaufen, lehrt einmal ihr konstantes Vorkommen gegenüber dem sehr wechselnden Verhalten aller oben charakterisierten Einschlüsse. Die Protoplasmagrundmasse und der Zellkern sind es auch, die sich gegen eindringende Giftstoffe am längsten wehren.
Davon kann man sich an vielen lebenden Zellen mit Hilfe von basischen Farbstoffen leicht überzeugen; Neutralrot z. B. wird von sehr vielen lebenden Zellen sehr schnell aufgenommen, läßt aber die Protoplasmagrundmasse und den Zellkern ungefärbt, solange die Zelle lebt. Der Farbstoff wird dann nur an paraplasmatische Bestandteile des Zytoplasmas (Vakuolen, Granula) verankert. Erst mit dem Zelltode färben sich auch Grundmasse des Protoplasmas und Zellkern.
Eine der wesentlichen Eigenschaften des Protoplasmas liegt in seiner Veränderlichkeit, die bei der Entstehung von Differenzierungsprodukten zum Ausdruck kommt. Die Mannigfaltigkeit der Zellstrukturen, der wir in den nächsten Kapiteln begegnen werden, ist davon ein beredtes Zeugnis. Diese Veränderlichkeit beruht z. T. auf Quellungs- und Entquellungsvorgängen; hierdurch können fädige und wabige Gerüststrukturen gebildet werden. Durch Aussonderung bestimmter Stoffe aus der Grundmasse mögen viele körnige und tropfige Zellgebilde (Vakuolen, Granula) entstanden sein. Vielfach handelt es sich bei solchen Einschlüssen auch um Substanzen, die, von der Umgebung der Zelle aufgenommen, sich nicht der Grundmasse des Protoplasmas beimischen, sondern an besonderen Orten gespeichert werden. So kommt es, daß von den mannigfachen Strukturelementen des Zytoplasmas nur von wenigen mit Sicherheit gesagt werden kann, ob sie als Differenzierungen des Protoplasmas oder als paraplasmatische Stoffe zu bezeichnen sind.
Durch die meisten Fixationsmittel wird das Protoplasma gefällt, so daß hierdurch an Stelle des homogenen Bildes, das das unfixierte Eizellenprotoplasma darbietet, körnige, fädige Gerinnsel erkennbar werden. So kommt es oft durch die angewandte Methodik zur Entstehung von künstlich hervorgerufenen Strukturen, die mit der lebendigen Struktur nicht gleichgesetzt werden dürfen.
Der gleichen Schwierigkeit wie beim Zytoplasma begegnen wir in der Deutung der Strukturen des Zellkernes. In der unfixierten Eizelle der Säugetiere erkennen wir in günstigen Fällen nur die scharfe Begrenzung gegen das Zytoplasma, die durch die Kernmembran bewirkt wird, und ein etwas stärker lichtbrechendes Körperchen, den Keimfleck (Nukleolus). Fixierte Kerne ergeben, daß der Kerninhalt eine große Mannigfaltigkeit substantiell und funktionell verschiedener Gebilde enthält. Am deutlichsten werden die heute unterschiedenen Formbestandteile bei der Anwendung von Farbstoffen auf fixierte Zellkerne. Danach unterscheidet man:
1. den Kernsaft, d. i. die strukturlos erscheinende Grundmasse des Zellkernes, die sich am schwersten mit Farbstoffen belädt;
2. die Kernmembran;
3. ein sog. achromatisches Gerüst [53], das das ganze Kerninnere durchzieht;
4. die chromatischen [53] Substanzen;
5. die Nukleolarsubstanzen.
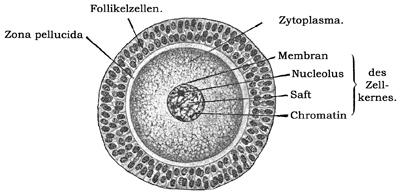
Fig. 7
.
Schnitt durch eine im Eierstock liegende Eizelle des Kaninchens. 250mal vergrößert. Technik Nr. 5, S. 73.
Die mikrochemische Analyse der Kernsubstanzen darf trotz beträchtlicher Ansätze zu einer Lösung dieser wichtigen Frage noch nicht als gelungen betrachtet werden. So haben die chemischen Bezeichnungen Nuklein für Chromatin, Linin[54] für das achromatische Gerüst, Amphipyrenin[55] für die Kernmembran, Pyrenin für die Nukleolarsubstanz nicht den Wert der Lokalisation chemisch definierter Substanzen.
Am Zellkern werden unter verschiedenen Zuständen sehr charakteristische Formwandlungen beobachtet; man unterscheidet deshalb als zwei Hauptzustände die Ruheform und die Teilungsformen des Zellkernes (über die letzteren s. u. S. 64ff.). Von einer Ruheform kann aber nur in beschränktem Sinne gesprochen werden. Die in diesem Zustande angetroffenen Unterschiede im Aufbau des Zellkernes sind nur minder auffällig und deshalb schwerer zu deuten.
Der Kernsaft ist einer Analyse bisher kaum zugänglich gewesen, er wird deshalb oft als nebensächlich angesehen, obwohl es nicht unwahrscheinlich ist, daß er bei den Stoffwechselvorgängen der lebenden Zelle die Hauptrolle spielt, entsprechend dem Protoplasma im Zytoplasma. Er dürfte eine wesentlich flüssige Konsistenz besitzen und so für die mannigfachen Formänderungen, zu denen viele Zellkerne fähig sind, die physikalische Voraussetzung bilden.
Die Kernmembran bildet eine zumeist, besonders im Einzellenkern morphologisch gut faßbare Struktur, die als äußere Hülle die Grenze gegen das Zytoplasma darstellt. Ihr dürfte für den Stoffaustausch zwischen Kern und Zytoplasma eine wesentliche Bedeutung zukommen. Bei allen Formveränderungen des Kernes paßt sie sich geschmeidig der Umgebung an. Sie färbt sich unter ähnlichen Bedingungen wie die Nukleolen.
Das achromatische (Linin-)Gerüst ist morphologisch eng verknüpft mit dem Chromatin und im ruhenden Kern hauptsächlich durch sein Verhalten zu vielen Farbstoffen von ihm unterschieden. Beide zusammen bilden das Kerngerüst, dessen Grundlage, aus netzig zusammengewirkten Fäden bestehend, das Achromatin bildet, während das Chromatin in gut fixierten Kernen in der Form von feinsten, rundlichen Körnchen (Chromiolen) längs des Gerüstes aufgereiht ist. Dem Chromatin wird im allgemeinen die Hauptrolle bei den wichtigsten Lebensvorgängen zugeschrieben.
Als Nukleolarsubstanz bezeichnen wir größere Substanzkomplexe, die sich bei manchen Methoden anders als das Chromatin färben, und im Kernsaft oder im Kerngerüst liegen (über diese Lagebeziehung ist eine Einigung noch nicht erzielt)[56]. Den Nukleolus (Keimfleck) der Eizelle erkennt man in der gleichen Form im unfixierten Präparat. In der Zeit des stärksten Stoffansatzes beim Wachstum der Eizellen vermehrt sich die Nukleolarsubstanz, so daß bei den dotterreichen Eiern der Fische, Amphibien, Reptilien in dieser Zeit zahlreiche Nukleolen auftreten. Besonders aus diesen Tatsachen darf man den Schluß ziehen, daß die Nukleolarsubstanz ein Stoffwechselprodukt ist, das sich bei regen Umsetzungen stärker ansammelt. Möglicherweise treten auch zu bestimmten Zeiten Nukleolarsubstanzen durch die Kernmembran in das Zytoplasma über. Die wechselnde Zusammensetzung der Nukleolen (Vakuolen in ihrem Innern, die z. B. als Schroensches Korn im Keimfleck beobachtet werden, ferner aus verschiedenen Substanzen bestehende Nukleolen) dürfen auch als ein Zeichen der passiven Natur angesehen werden.
Die äußerst wechselnde Form des Zellkernes, wie die Mannigfaltigkeit seiner Zusammensetzung wird bei der Besprechung der verschiedenen Gewebszellen klar zutage treten. Stets aber finden wir, mehr oder weniger abgewandelt, die Bestandteile wieder, die der Kern der Eizelle aufweist.
B. Teilung, Wachstum und Differenzierung.
Von den meisten in der Eizelle sich abspielenden Lebensvorgängen können wir morphologisch nichts erkennen. Eine deutliche Veränderung in der Anordnung der Zellsubstanzen wird erst sichtbar, wenn die Entwicklungsvorgänge einsetzen, die zur Ausbildung eines zusammengesetzten Organismus führen. Der Beginn dieser Entwicklung ist bei den meisten Tierarten an die Befruchtung durch eine Samenzelle gebunden. Über die Organisation der Samenzelle s. später; über den Befruchtungsvorgang s. die Lehrbücher der Entwicklungsgeschichte.
Die befruchtete Eizelle enthält außer den umgewandelten Substanzen der Eizelle noch den Kern und Teile des Zytoplasmas der Samenzelle, die bei der Befruchtung in die Eizelle hineingelangt sind. Unter diesen neu hinzugekommenen Bildungen ist das Mikrozentrum besonders auffällig. Im Zytoplasma befruchteter Eizellen nimmt diese Bildung die Mitte eines kleinen helleren Hofes ein, der als Zentrosoma bezeichnet wird. In ihm lassen sich ein, zwei (oder mehrere) Zentralkörperchen (Zentriole) nachweisen, die mit bestimmten Färbemethoden deutlich scharf hervortreten.
An die als Zentrum bezeichnete Struktur knüpfen sich bei den bald nach der Befruchtung einsetzenden Zellteilungen die auffallendsten Veränderungen in der Anordnung des Zytoplasmas.
Inwieweit das Zentrum in der unbefruchteten Eizelle noch vorhanden ist (s. Balbianischer Dotterkern S. 60), ist unbestimmt.
Neben solchen zytoplasmatischen Veränderungen ist es besonders der Zellkern, der in einer merkwürdig regelmäßigen Folge Umwandlungen erleidet, wenn es sich darum handelt, das gesamte Zellmaterial zu teilen. Die vollkommenste Teilung, d. h. eine Teilung, bei der eine möglichst gleichmäßige Halbierung aller Zellbestandteile ermöglicht wird, nennen wir indirekte Teilung oder Mitosis[57].
Ihr Verlauf, den man gewöhnlich in drei Phasen teilt, ist folgender:
1. Stadium. Prophase.
Mikrozentrum und Kern nähern sich einander, schließlich gelangt ersteres in die nächste Nähe der Kernmembran, wobei in dem das Zentrum umgebenden Zytoplasma in radiärer Richtung ausstrahlende feine Fäden deutlich sichtbar werden. Die Summe dieser Fäden heißt Astrosphäre. Dann teilt sich das Zentrum in zwei, je von einer Astrosphäre umgebene Zentren, die auseinander rücken (Fig. 8). Dann vergrößert sich der Kern, das Kerngerüst wird chromatinreicher und seine Chromatinstränge erscheinen alsbald in Form einer für jede Tierart konstanten Anzahl (beim Menschen 24) von geschlängelten Teilstücken (Chromosomen), die quer zur Längsachse des Kerns gestellt sind.
Diese Teilstücke sind auch an vielen ruhenden Kernen vorhanden, sie sind aber wegen der vielen Seitenäste, durch welche sie sich mit ihren Nachbarn zu einem Netzwerk verbinden, nicht leicht zu unterscheiden. Mit Beginn der Teilung werden die Seitenäste eingezogen, dadurch werden die Teilstücke dicker und erscheinen deutlicher.
Die Gestalt der Teilstücke ist meist die von winklig gebogenen Fäden, „Schleifen“, deren Umbiegungsstellen („Scheitel“) nach der einen, dem Zentralkörperchen zugekehrten Seite („Polseite“, „Polfeld“), deren freie Enden nach der andern Seite („Gegenpolseite“) gerichtet sind. Die Teilstücke bilden in diesem Stadium einen „dichten Knäuel“ (Fig. 8 u. 19), werden aber bald immer dicker und verlaufen mehr gestreckt: dadurch wird aus dem dichten Knäuel ein „lockerer Knäuel“.
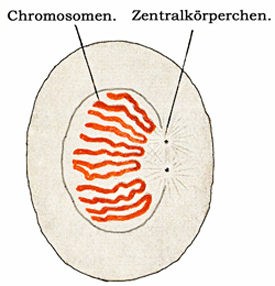
Fig. 8.
Schema des dichten Knäuels.
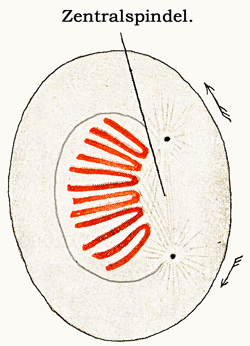
Fig. 9.
Schema des lockeren Knäuels.
Unterdessen rücken die zwei meist an Umfang zunehmenden Zentralkörperchen weiter auseinander und wandern entlang der Kernmembran je einem Punkte zu, der 90° von ihrer ursprünglichen Lagerstätte entfernt liegt. Zwischen den auseinanderrückenden Zentralkörperchen spannen sich feine Fasern, welche die „Zentralspindel“ bilden. An sie legen sich Fäden der Astrosphären an, die man jetzt bis zu den als einzelne Chromosome unterscheidbaren Chromatinsträngen verfolgen kann. Gegen das Ende der Prophase ist die Kernmembran verschwunden und auch das Kernkörperchen ist unsichtbar geworden.
Das bisher beschriebene Verhalten der Zentralkörperchen hat nicht allgemeine Gültigkeit; so teilt sich z. B. bei Ascaris megalocephala univalens das Zentralkörperchen innerhalb des Kerns, der sich streckt und an seinen Enden je ein Zentralkörperchen austreten läßt. Mit dem Austritt bildet sich die Kernspindel.
2. Stadium. Metaphase.
Die Zentralkörperchen haben einander entgegengesetzte Punkte erreicht, ihre zu den Chromosomen ziehenden Fäden, zu denen sich vielleicht Teile der Kernmembran und der Nukleolensubstanz gesellt haben, erscheinen jetzt unter dem Bilde einer Spindel, der „Kernspindel“, an deren Spitze je ein relativ sehr großes Zentrum gelegen ist, das von seiner Astrosphäre, die man in diesem Stadium auch „Polstrahlung“ nennt, umgeben wird. Die Chromosomenschleifen rücken in den Äquator der Spindel, in die künftige Teilungsebene des Kernes und stehen bald so, daß ihre Scheitel gegen die Spindelachse, ihre freien Enden gegen den Äquator gerichtet sind. Von einer Spindelspitze her gesehen erscheint diese Gruppierung unter dem Bilde eines Sternes, des Muttersternes (Monaster) (Fig. 10, 11, 12, 19).
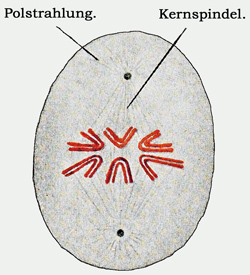
Fig. 10.
Schema des Muttersternes.
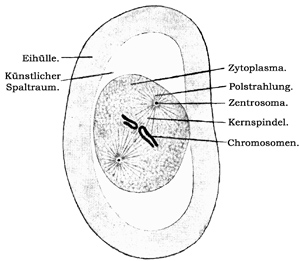
Fig. 11.
Schnitt durch ein in Teilung begriffenes Ei des Pferdespulwurms (Ascaris megalocephala). Diese Fig. stammt von der Art, deren Zellen nur 2 Chromosomen enthalten (univalens). 750mal vergrößert. Technik Nr. 7, S. 74.
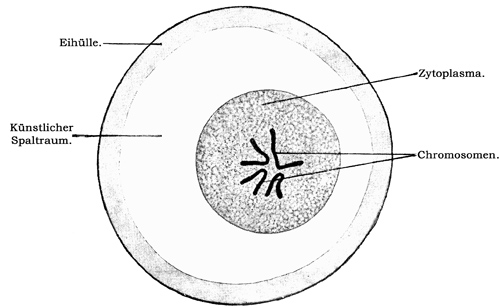
Fig. 12.
„Mutterstern“ bei der Teilung des Ascariseies, von einem Pol aus gesehen. Diese Fig. stammt von der Art, deren Zellen 4 Chromosomen enthalten (bivalens). 750mal vergrößert. Technik Nr. 7, S. 74.
Während der Bildung des Muttersternes, oft schon früher, in den ersten Stadien der Prophase, spalten sich die Chromosomenschleifen der Länge nach, so daß aus je einer Schleife zwei „Schwesterschleifen“ werden. Jetzt erfolgt eine Teilung des Kernes genau in zwei Hälften, indem durch die Kontraktion der Spindelfäden (?) die eine Schwesterschleife zu einem Pol, die andere Schwesterschleife zum andern Pol der Kernspindel gezogen wird. Man nennt diesen Vorgang Metakinesis[58] (Fig. 13); er ist mit einer Entfernung der Zentralkörperchen voneinander verknüpft. In diesem Stadium erscheinen die Kernsegmente in Form zweier „Tochtersterne“, sie bilden den „Dyaster“. Jeder Tochterstern zeigt Pol- und Gegenpolseite (Figur 14 und 19).
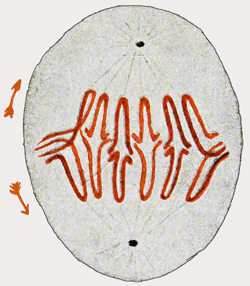
Fig. 13.
Schema Metakinesis.
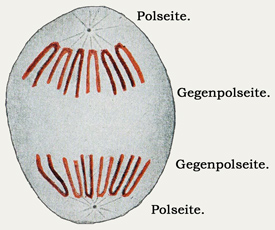
Fig. 14.
Schema Tochtersterne.
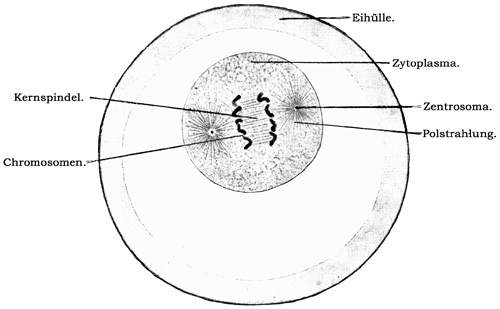
Fig. 15.
„Dyaster“ bei der Teilung des Ascariseies (4 Chromosomen). 750mal vergrößert. Technik Nr. 7, S. 74.
3. Stadium. Anaphase.
Bald verwischen sich diese Verhältnisse, indem das Zentrum sich wieder verkleinert, dann sich verdoppelt und die Chromosomen Seitenzweige zur Verbindung mit Nachbarchromosomen ausschicken und so das Gerüst des ruhenden Kernes erzeugen. Während die Spindel und der größte Teil der Polstrahlung unsichtbar werden und eine neue Kernmembran (von der Gegenpolseite ausgehend) erscheint, schwillt der Kern durch Aufnahme von Kernsaft mehr an, wird kuglig und es erscheinen Kernkörperchen; zugleich beginnt am Äquator der Zelle eine Teilung des bis dahin einfachen Zytoplasmas (Fig. 16), welche bis zur vollkommenen Trennung in zwei nicht immer gleiche Hälften führt.
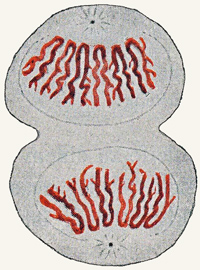
Fig. 16.
Schema Zytoplasmateilung.
Sind die Teilprodukte von Zytoplasma und Kern ungleich groß, dann spricht man von Knospung; es sieht aus, als wenn die Zelle einen Sproß, eine Knospe triebe, die sich abschnürend zu einer selbständigen Zelle wird.
Durch die mitotische Teilung wird vor allem das Chromatinmaterial auffallend gleichmäßig auf die Tochterzellen verteilt; trotz der zahlreichen Versuche, die merkwürdigen während der Mitose auftretenden Zytoplasmastrukturen an unorganisiertem Material nachzuahmen — Versuche, die für einzelne Strukturen ein Verständnis anbahnen — sind wir von einer mechanischen Erklärung der Mitose noch weit entfernt.
In seltenen, vorzugsweise pathologischen Fällen erfolgt auch eine gleichzeitige Teilung in mehr als zwei Kerne nach dem Typus der Mitose, sogenannte pluripolare Mitose.
Die Dauer einer Zellteilung, bei welcher die einzelnen Stadien nicht gleichmäßig schnell ablaufen, schwankt von 1/2 Stunde (beim Menschen) bis fünf Stunden (bei Amphibien).
Bis zum völligen Verschwinden der Mitosen in der menschlichen Leiche vergehen 48 Stunden.
Die mitotische Teilung darf für alle Abkömmlinge der Eizelle als die Regel gelten. Es gibt aber noch eine zweite Art der Kernteilung, die direkte oder amitotische Teilung; hier erfolgt keine typische Gruppierung des Kerngerüstes, sondern eine einfache Teilung, zuerst des Kernkörperchens, dann des Kernes (Fig. 17). Eine Teilung des Zytoplasmas unterbleibt hier bei den Wirbeltieren unter normalen Verhältnissen in der Regel, so daß keine Zell-, sondern nur eine Kernvermehrung vorliegt, die, meist als ein Zeichen des Zugrundegehens, an Leukozyten und Harnblasenepithelien sehr häufig beobachtet wird.
In der ersten Entwicklungszeit der Eizellen bilden fortgesetzt aufeinanderfolgende Zellteilungen (Furchungen) die Hauptveränderung, die wir beobachten können. Durch sie wandelt sich die Eizelle in einen Haufen gleichartig gebauter, aber viel kleinerer Zellen (Blastomeren[59]) um. Die Summe der Blastomeren nimmt den Raum ein, den vorher die Eizelle einnahm (Fig. 18).
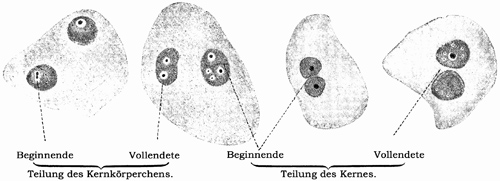
Fig. 17.
Zellen des Harnblasenepithels einer Maus. Technik Nr. 8, S. 74. 560mal vergr.
Erst von jetzt ab treten neue Veränderungen ein, die zur Ausbildung des fertigen Organismus hinleiten und uns mit wichtigen allgemeinen Zelleigenschaften bekannt machen; wir bezeichnen diese Vorgänge als Wachstum und Differenzierung.
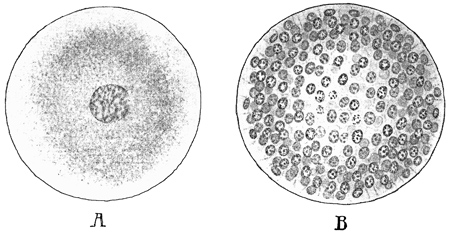
Fig. 18.
Unreifes Ei (A) und in viele Blastomeren geteiltes Ei (B) vom Seeigel bei gleicher (500facher) Vergrößerung. Technik Nr. 9, S. 75.
Das erste Wachstum des Keimes beruht auf einer beträchtlichen Wasseraufnahme, die Hohlräume zwischen den Blastomeren verursacht. Dazu kommt aber die Fähigkeit der Zellen, ihre Leibessubstanz durch Ansatz neuer Stoffe zu vermehren. Sobald die Zellen, die nach einer Teilung ja nur halb so groß sind als die Mutterzelle, dazu übergehen, ihr Zytoplasma erst auf die Größe der Mutterzelle heranwachsen zu lassen, ehe sie mit einer neuen Teilung beginnen, bedeutet Zellteilung gleichzeitig Vermehrung der Gesamtmasse des Keimes. Von einer gewissen Entwicklungsstufe des Keimes an ist das Heranwachsen der Zellen in der Ruhepause zwischen zwei Zellteilungen die Regel.
Erst in späteren Ausbildungsstufen, wenn die Zellen sich nicht mehr bloß vermehren, sondern allmählich für verschiedene Aufgaben bestimmt werden, setzen dann die Wachstumsveränderungen ein, die zu der für jede differenzierte Zelle charakteristischen Größe führen. Die endgültige Größenänderung ist dann zumeist mit einer Formänderung verbunden, so daß die mehr oder weniger typischen Gestalten der verschiedenen Zellarten dabei definiert werden. Bei diesen Wachstumsvorgängen verändert sich das Zytoplasma gewöhnlich in stärkerem Maße als der Zellkern; bei ungleichmäßigem Wachstum desselben wird die Zelle gestreckt, abgeplattet oder verästelt usw.
Die meisten Zellen sind weich und imstande, unter mechanischen Einflüssen ihre Form zu verändern; so werden z. B. die in der leeren Harnblase zylindrischen Epithelzellen in der gefüllten Blase zu niedrig abgeplatteten Gebilden (s. Fig. 295); Epithelzellen des Bauchfelles können durch Dehnung das Dreifache ihrer normalen Flächenausbreitung erhalten.
Das ungleichmäßige Wachstum ist also schon ein Teilvorgang dessen, was wir als Differenzierung bezeichnen. Über das Wesen dieses Vorganges sind wir nicht unterrichtet. Wir wissen, daß sich im erwachsenen Organismus unter dem Einfluß besonderer Reizwirkungen, die an die Funktion eines Gewebes gesteigerte Ansprüche stellen, die Zusammensetzung mancher Gewebe in zweckentsprechender Weise ändern kann; man wird hiernach daran denken müssen, daß es auch bei der ersten Entstehung bestimmter Gewebsdifferenzierungen ein neuer Reiz war, der zur Ausbildung der neuen Gewebsstruktur führte. Dieser Möglichkeit steht aber die Tatsache gegenüber, daß die große Mehrzahl der Differenzierungen schon in einer Entwicklungsstufe auftritt, in der eine funktionelle Beanspruchung in den allermeisten Fällen kaum in Frage kommt. Ist also das Entstehen der Gewebsstruktur in Vorstufen heutiger Organismen die Folge einer Reizwirkung gewesen, so muß man, um den Tatsachen gerecht zu werden, die Annahme machen, daß die einmal erworbene Fähigkeit durch Vererbung in den Organismen auch dann Strukturen bildet, wenn der Bildungsreiz wirksam ist.
Dieser Gedankengang würde also die Möglichkeit einer Vererbung erworbener Eigenschaften zugeben. Schließt man, wie viele Forscher es tun, diese Möglichkeit aus, so muß man umgekehrt die Struktur als das primär Gegebene betrachten und annehmen, daß nur passend strukturierte Gewebe ihre Aufgabe zu erfüllen imstande waren. Nur solche aber konnten erhalten bleiben. Wie im Falle der letzteren Annahme die erste Gewebsdifferenzierung zustande kam, bleibt dabei unerörtert.
Ob die Entstehung von Strukturen im lebenden Organismus in allen Fällen an die Tätigkeit von Zellen gebunden ist, ist durchaus zweifelhaft. In einer großen Reihe von Fällen werden Körpersubstanzen nicht nur von Zellen zusammengesetzt, sondern außerdem von z. T. mächtig entwickelten, sogenannten Interzellularsubstanzen. In diesen sind ebenfalls die verschiedensten Strukturelemente zu erkennen. Es ist deshalb zweckmäßig zwischen intrazellulären und extrazellulären Differenzierungen zu unterscheiden.
Wie bei der Eizelle ausgeführt wurde, ist es oft schwer zu sagen, ob bestimmte Differenzierungsprodukte einen selbständigen Stoffwechsel besitzen und damit zu den „lebenden“ Körperbestandteilen gehören, oder ob sie wesentlich passiver Natur sind. Im letzteren Falle würden sie dem Metaplasma zuzurechnen sein. Es ist zweckmäßig, bei diesen Festsetzungen die äußerste Zurückhaltung zu bewahren. Zudem müssen wir annehmen, daß es auch Strukturen mit äußerst geringem Stoffwechsel gibt, denen aber trotzdem eine gewisse Lebenstätigkeit nicht abgesprochen werden darf.
In der Regel nimmt mit dem Differenzierungsgrad der Zellen ihre Vermehrungsfähigkeit ab, so daß wir eine Reihe von hochspezialisierten Zellformen kennen, die zur Teilung überhaupt nicht mehr befähigt sind. Da die Lebensfähigkeit der Zellen überhaupt begrenzt und in der Regel geringer ist als diejenige des Gesamtorganismus, so finden sich für fast alle Zellarten auch im erwachsenen Organismus gewisse Jugendformen, aus denen durch Teilung und Differenzierung ein Ersatz für verbrauchte Zellen entstehen kann. Absterbende Zellen sind charakterisiert durch Volumenabnahme von Kern und Zytoplasma, welch letzteres oft am Rande angenagt erscheint oder sich stärker färbt, während im Kerne die chromatische Substanz entweder abnimmt oder sich zu kompakten, unregelmäßig geformten, intensiv sich färbenden Brocken („pyknotische Kerne“[60]) zusammenballt. Auch Vakuolen im Zytoplasma und im Kerne sind oft Zeichen absterbender Zellen.
Technik.
Nr. 1. Frische Eier erhält man auf folgende Weise: Man verschaffe sich aus dem Schlachthause ein paar frische Eierstöcke einer Kuh. Die großen Bläschenfollikel sind durchscheinend, von Erbsengröße und lassen sich mit einer Schere leicht in toto herausschälen. Nun übertrage man den isolierten Follikel auf einen Objektträger und steche ihn mit der Nadel vorsichtig an. Das Anstechen muß an der auf dem Objektträger liegenden Seite vorgenommen werden, sonst spritzt der Liquor im Bogen heraus und mit ihm das Ei. In dem ausfließenden Liquor folliculi findet sich, umgeben von Zellen des Cumulus oophorus (s. unter Ovarium), das Ei (Fig. 3), welches, ohne daß das Präparat mit einem Deckglase bedeckt wird, mit schwacher Vergrößerung aufgesucht werden muß. Will man mit starken Vergrößerungen untersuchen, so bringe man zu seiten des Eies ein paar feine Papierstreifen und lege dann ein Deckglas vorsichtig auf.
Der Anfänger wird manchen Follikel opfern, ehe es ihm gelingt, ein Ei zu finden. Oft tritt das Ei nicht sofort beim Anstechen heraus und wird erst nach wiederholtem Zerzupfen des Follikels gefunden.
Nr. 2. Froscheier. Die einem laichreifen Froschweibchen entnommenen Eier kann man frisch unter einem Deckglas zerquetschen; man kann dann leicht kleinere und größere Dotterplättchen, Pigmentkörnchen und andere Granula untersuchen.
Um Dauerpräparate mit Erhaltung der Übersicht herzustellen, werfe man eine Anzahl Eier in Zenkersche Flüssigkeit (s. S. 16, Nr. 8) und lasse sie hierin einige Wochen liegen, wodurch die die Weiterverarbeitung störende Gallerthülle zerfällt. Dann entwässere man (jodieren! s. S. 16), und bette in Kollodium-Nelkenöl-Paraffin ein nach folgendem Verfahren:
Alkohol abs. 10 Minuten,
Kollodium-Nelkenöl (zu gleichen Teilen zusammengießen und 24 Stunden unbedeckt stehen lassen, bis der Äthergeruch im wesentlichen geschwunden ist 10 "
mit einem Pinsel auf Fließpapier übertragen und vorsichtig von anhängendem Kollodium-Nelkenöl befreien,
Chloroform 5 "
Paraffin I 5 "
Paraffin II 5 "
Einbetten (s. S. 23).
Durch dieses Einbettungsverfahren gelingt es leicht, den sonst sehr brüchig werdenden Dotter zu schneiden.
Die Schnitte können ungefärbt montiert werden.
Nr. 3. Zur Färbung der Plastosomen muß besonders fixiertes Material verwandt werden. Eierstöcke kleiner Säugetiere (Maus, Meerschweinchen, Ratte) kann man ganz oder halb durchschnitten, von größeren Säugetieren kann man nur kleine Stücke von Ovarien einlegen in Altmannsches Fixierungsgemisch:
Überosmiumsäure 2%ig 3,0
Kal. bichrom. 5%ig 3,0.
Gründlich wässern, dann entwässern und Einbetten, in Paraffin oder in Zelloidin-Paraffin. Sehr dünne Schnitte (1 bis höchstens 3 µ).
Dann färben nach Altmanns Anilinöl-Fuchsinmischung, die man sich folgendermaßen bereitet:
In 100 ccm Anilinwasser (5-10 ccm Anilinöl mit 100 ccm Aqua dest. gut durchgeschüttelt und filtriert) löst man 20,0 g Säurefuchsin. Vor dem Gebrauch filtrieren!
Diese Lösung tropft man auf den Objektträger und erwärmt über einer Flamme bis Dämpfe aufsteigen; diese Prozedur wird 2-3mal wiederholt, zuletzt läßt man die Farblösung über dem Objekt vollständig erkalten, gießt ab und beginnt mit der Differenzierung in Pikrinsäurealkohol (1 Vol. gesättigte, alkoholische Pikrinsäure zu 7 Vol. 20%igem Alkohol). Nur Übung läßt den richtigen Differenzierungsgrad erkennen, bei dem im Zytoplasma nur Plastosomen (und manche andere granuläre und fibrilläre Einschlüsse), im Kern höchstens die Nukleolen gefärbt sein sollen. Diese treten dann rot auf gelblichem Hintergrund hervor.
Nach genügender Differenzierung gründliches Ausspülen in Alk. 95%, Alk. abs., Xylol, Balsam.
Ist die Färbung nicht richtig angegangen oder wurde zu stark differenziert, so muß das Präparat wieder in Wasser zurückgeführt werden, worauf die Färbung von neuem begonnen werden kann.
Über andere Methoden zur Fixierung und Färbung der Plastosomen siehe die Spezialwerke über Mikrotechnik.
Nr. 4. Das Verhalten von Neutralrot zu lebenden Zellen studiert man am besten an Infusorien, die man sich dadurch züchtet, daß man Heu mit Wasser übergießt und die allmählich an der Wasseroberfläche entstehende Kahmhaut untersucht. In ihr sind besonders häufig die für solche Untersuchungen sehr günstigen Paramäzien vorhanden. Nun bringt man mit einer sauberen Pipette eine Anzahl Infusorien in ein Uhrschälchen, in dem sich einige Kubikzentimeter einer Neutralrotlösung 1 : 30000 befinden.
Nach kurzer Zeit sind die Nahrungsvakuolen, etwas später die sog. Entoplasmakörnchen gefärbt. In dieser Lösung halten sich viele Infusorien tagelang gefärbt am Leben. Setzt man aber dem Präparat vom Deckglasrande her einen Tropfen stärkerer (etwa 1%iger) Neutralrotlösung zu, so sterben die Infusorien sehr rasch unter intensiver Diffusfärbung des Zytoplasmas und des Zellkernes ab.
Ähnliche Versuche lassen sich auch an den meisten Körperzellen zusammengesetzter Organismen vornehmen (supravitale Färbung).
Nr. 5. Man fixiere Ovarien kleiner Säugetiere ganz, größere (auch die des Menschen) nach Anbringung von tiefen Querschnitten in reichlichen Mengen (100 bis 200 ccm) Zenkerscher Lösung (S. 16). Weiterbehandeln nach Nr. 110.
Frosch- oder Reptilieneier zum Studium der Kernveränderungen während des Eizellenwachstums findet man in den Ovarien, behandelt sie nach den Vorschriften, die für die Säugetiereier gegeben wurden, bettet aber hier nur mit Zelloidin oder Zelloidin-Paraffin ein, da diese Objekte in Paraffin allein zu brüchig werden.
Nr. 6. Zu Studien über Kernstrukturen und mitotische Teilungen eignen sich am besten Entwicklungsformen von Amphibien. Im Frühjahr frisch eingefangene Molche laichen im Aquarium ab. Behandelt man Morula- oder junge Blastulastadien nach Technik Nr. 2, so findet man in Schnitten meist reichlich Kernteilungsstadien. Färben: Hansens Hämatoxylin, differenzieren in Pikrinsäure, Alk. 95%, Alk. abs. Xylol.
Sehr leicht kann man sich die Larven unserer Molche (der sog. Wassersalamander) verschaffen, die in den Monaten Juni und Juli in Massen jeden kleinen Tümpel bevölkern. Man bringe die frischgefangenen 3-4 cm langen Exemplare
a) in ca. 100 ccm Chrom-Essigsäure (S. 6), in der sie rasch sterben 3 Stunden,
dann b) in womöglich fließendes Wasser 8 "
dann c) in Alkohol 70% 4-24 "
dann d) in Alkohol 90% beliebig lang.
a) Für Kernstrukturen kratze man vorsichtig mit einem Skalpell das Epithel der Bauchhaut ab, ziehe dann den Rest, das dünne Corium, mit zwei spitzen Pinzetten vom Bauche, färbe das abgezogene in Hansenschem Hämatoxylin (S. 32) und schließe es in Xylolbalsam (S. 45) ein.
Sehr zu empfehlen ist auch Fixierung mit Chromosmiumessigsäure (S. 17) und Färbung mit Saffranin nach Ansäuerung (S. 34).
Man sieht teilweise noch die runden Drüsen, zwischen diesen aber schöne Bindegewebszellen mit großen Kernen. Der feinere Bau des Zytoplasma, der Zentralkörperchen und Sphäre sind ebenso wie die feinen Kernstrukturen nur bei Anwendung stärkster Vergrößerung und komplizierter Methoden zu erkennen.
Auch quergestreifte Muskeln des Schwanzes und glatte Muskelfaserhäute, welch letztere man sich leicht durch Abziehen der Darmmuskularis verschaffen kann, liefern schöne Bilder.
b) Für mitotische Kernteilungen, die schon bei der oben erwähnten Behandlung vereinzelt zur Beobachtung gelangen, umschneide man mit einer feinen Schere den Hornhautrand und ziehe mit einer feinen Pinzette die Hornhaut, eine dünne Scheibe ab, was ganz leicht gelingt; färbe und konserviere wie a). Das Präparat muß so liegen, daß die konvexe Hornhautseite nach oben gekehrt ist; im Epithel sieht man schon bei schwacher Vergrößerung viele Kernteilungsbilder, welche sich durch ihre intensive Farbe verraten; bei stärkerer Vergrößerung Bilder wie in Fig. 19.
Kernspindel und Polstrahlungen sind bei dieser Methode nur an besonders günstigen Präparaten, z. B. an Eiern von der Forelle, von Amphibien (der Mutterstern rechts oben stammt von einem Ei von Siredon) wahrzunehmen. Zentralkörperchen und erste Stadien der Spindelbildung sind nur mit Immersionslinsen und an Präparaten, die nach Technik Nr. 10 (S. 90) hergestellt sind, zu sehen.
Auch die an der konvexen Seite der knorpeligen Kiemenbogen herabhängenden zarten Lamellen, sowie das Epithel des Mundhöhlenbodens, sind sehr geeignet. Zuweilen findet man bei einem Tiere keine einzige Kernteilung, was sich durch die bekannte Tatsache des „schubweisen“ Auftretens der Mitosen erklärt.
Nr. 7. Askariseier. Pferdespulwürmer finden sich im Darminhalt geschlachteter Pferde; man entnimmt den Würmern die ganzen Eischläuche, in denen am nächsten nach der äußeren Geschlechtsöffnung zu Teilungsstadien der befruchteten Eier zu finden sind. Diese untersten Abschnitte der Eileiter fixiert man 3-6 Std. in Carnoyscher Flüssigkeit:
Alk. abs. 60,0,
Chloroform 30,0,
Eisessig 10,0.
Dann übertragen in Alk. absol.
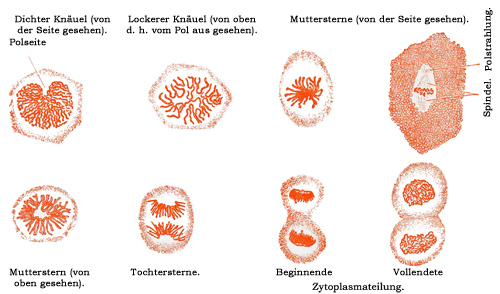
Fig. 19.
Kernteilungsbilder aus Flächenpräparaten des Mundhöhlenepithels von Triton alpestris. 560mal vergrößert.
Für Totalpräparate färbt man in dünnen Röhrchen, aus denen man die Flüssigkeiten jeweils vorsichtig absaugen muß, mit dünnem Hämatoxylin oder Bismarckbraun.
Für Schnittpräparate (am besten 10 µ) bettet man in Paraffin ein und färbt die Schnitte mit Eisenhämatoxylin (s. S. 40).
Das Askarismaterial ist nicht leicht zu behandeln, so daß es sich empfiehlt, nicht zu wenig zu konservieren.
Nr. 8. Amitotische Kernteilungen. Vorbereiten: a) ein zuerst mit absolutem Alkohol und dann mit Äther sorgfältig gereinigtes Deckglas; b) ein Gefäß mit 20 ccm Zenkers Flüssigkeit, Watte am Boden (S. 16). Einer mit Chloroform getöteten Maus wird die Harnblase ausgeschnitten, der Länge nach geöffnet und schnell mit der Schleimhautseite auf das Deckglas gelegt und sanft aufgedrückt: dabei bleiben die oberflächlichen Epithelzellen am Deckglas haften. Die Blase wird vorsichtig sofort wieder abgenommen,
das Deckglas schnell in b) gebracht 1 Stunde lang,
dann in destill. Wasser gewaschen 1/4 "
dann (je eine Stunde) in 40%, 50% usw. Alkohol gehärtet (S. 18), Färben mit Eisenhämatoxylin (S. 40), Einschließen in Xylolbalsam (S. 45). Nicht alle Zellen sind gleich gut konserviert und gefärbt, viele Zerrbilder.
Nr. 9. Seeigeleier läßt man sich am besten konserviert (Sublimat-Eisessig) von einer zoologischen Meeresstation senden. Sie werden dort durch Übergießen der frisch dem Weibchen entnommenen Eier mit verdünnter Samenflüssigkeit künstlich befruchtet und in verschiedenen Zeitabschnitten konserviert. Manche zoologischen Stationen (Neapel) versenden alle gewünschten Stadien konserviert.
Für Totalpräparate empfiehlt sich die Färbung des Materials mit Boraxkarmin mit Differenzierung in Salzsäure (s. S. 34).
Für feinere Untersuchungen (Kernteilungen) fertigt man Schnitte an, indem man einen Klumpen Eier in Paraffin einbettet, die Schnitte mit Eisenhämatoxylin färbt (s. S. 40).
C. Die Gewebe.
I. Epithelgewebe.
Bei allen komplizierter gebauten Organismen schließt sich die Körpersubstanz gegen die Oberfläche ebenso wie gegen innere Hohlräume durch ein fast nur aus mehr oder weniger primitiv gestalteten Zellen zusammengesetztes Gewebe ab, das wir als Epithel[61] bezeichnen. Die Art der Zellen, die mit den verschiedensten, spezifischen Einrichtungen versehen sein können, ihre Form und Zusammenlagerung läßt die mannigfaltigsten Lösungen des Problems, die Körpersubstanz abzuschließen, zu.
Weit verbreitet ist, besonders in der pathologisch-histologischen Literatur, die besondere Unterscheidung des Begriffes Endothel. Dieser Name ist etymologisch sinnlos (in der Brustwarze!); auch läßt sich die Unterscheidung der Endothelien von anderen Epithelien weder nach der Funktion, noch nach der Genese, noch nach der morphogenetischen Leistung scharf absondern. Es ist deshalb besser, statt von Kapillarendothelien, von Kapillarepithelien zu sprechen und ebenso in den anderen Fällen zu verfahren, in denen jetzt vielfach der Begriff Endothel verwandt wird. In diesem Buche wird an den entsprechenden Stellen erwähnt werden, wo von anderen Autoren der Begriff Endothel gebraucht wird.
Immer erscheint es als eine Hauptaufgabe der Epithelien, den Eigenbestand des Körpers an Flüssigkeiten zu erhalten; so sind überall die Spalten, die zwischen den Zellen liegen, nach der Oberfläche zu sorgfältig abgedichtet, so daß ein Flüssigkeits- und Stoffaustausch vermutlich nur unter unmittelbarer Anteilnahme der Zellen möglich ist. Für diese Stoffwanderung sind viele Epithelzellen besonders eingerichtet. So sprechen wir von resorbierenden Epithelien, wenn die Stoffwanderung ins Körperinnere, von sezernierenden Epithelien, wenn sie nach der inneren oder äußeren Oberfläche des Körpers gerichtet ist. Doch erfüllen auch diese besonders angepaßten Epithelien die allgemeine Aufgabe aller Epithelien, das Körperinnere vor ungeregeltem Säfteverlust zu schützen.
Die dichte Zellagerung, die diese Aufgabe erfordert, bewirkt eine gegenseitige Formbeeinflussung der einzelnen Zellen. Von der Fläche betrachtet, sind die Zellen aneinander gepaßt, wie die Steinchen in einem Mosaik.
Doch gibt es keine Starrheit im Aufbau eines Epithels; die Zellen sind zu andauernden Formveränderungen befähigt, was schon daraus zu schließen ist, daß bei vielen Epithelien fortwährend Zellen zugrunde gehen und durch neue ersetzt werden. Mit diesem Wechsel sind immer wieder neue gestaltliche Anpassungen nötig.
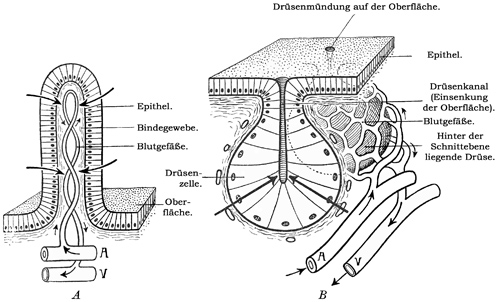
Fig. 20a und b.
Schemata, um die Stoffwanderung in resorbierenden (A) und sezernierenden (B) Epithelien darzustellen. Beachte die Oberflächenvergrößerung des resorbierenden Epithels nach der freien Oberfläche, diejenige des sezernierenden nach der Körpersubstanz zu.
Entsteht durch Verletzung eine Epithellücke, so wandern die am Wundrand liegenden Epithelzellen unter aktiver Formveränderung nach der Lücke hin und bedecken sie in kurzer Zeit.
Nur an der freien Oberfläche bildet sich durch Differenzierung häufig eine besondere Verdichtung des Zytoplasmas aus. Auch die Verbindungsweise der Zellen weicht von derjenigen eines Mosaiks stark ab; nicht eine besondere Kittsubstanz, sondern feinste Zytoplasmafädchen, die sich zwischen benachbarten Zellen ausspannen, bewirken das Haften der Zellen aneinander (Interzellularbrücken).
Diese sind sehr fein und nur schwer nachweisbar bei einschichtigen Epithelien, kräftiger sind sie in allen mehrschichtigen Epithelien, wo sie auch wegen der Weite der Interzellularspalten (s. u.) leichter sichtbar sind. Bei sehr fester Verbindung (Huf) verlaufen in den Interzellularbrücken besondere Fasern, die eine Versteifung darstellen und durch mehrere Zellen hindurch zu verfolgen sind (sog. Epithelfasern).
Ursprünglich waren wohl alle Epithelien einschichtig und aus kubischen, d. h. einigermaßen äquidimensionalen Zellen zusammengesetzt (Fig. 21).
In einschichtigen Epithelien sind alle Zellen (d. h. einen Kern enthaltenden Zytoplasmabezirke) mit der Unterlage in Verbindung.
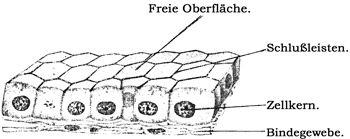
Fig. 21.
Kubisches Epithel. Halbschematisch, unter Verwendung eines Schnittes der Nierenpapille einer Katze. 500mal vergrößert. Technik Nr. 10, S. 90.
Eine starke Abflachung der Zellen eines einschichtigen Epithels ist in der Regel mit einer besonderen Steigerung der Durchlässigkeit verbunden (sogenanntes Plattenepithel in den Blutgefäßen, Lymphgefäßen, Lungenalveolen, serösen Höhlen (Fig. 22) usw.). An manchen Stellen (Lungenalveolen) verlieren die Zellen sogar ihre Zellkerne und werden zu extrem dünnen „kernlosen Platten“. Nur an geschützten Stellen des Körpers kann ein so dünnes Epithel ausgebildet werden.
Zwischen den Zellen finden sich häufig Lücken, sog. Stomata, die vermutlich beim Durchtreten sog. Lymphozyten entstehen, sich aber wohl in der Regel langsam schließen, also vorübergehende Bildungen darstellen.
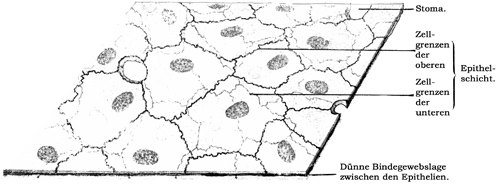
Fig. 22.
Omentum majus halbschematisch. Durch Zellgrenzenfärbung (Technik, S. 40) treten die Epithelschichten deutlich hervor, das Bindegewebe ist nur am Schnittrand angedeutet. 500mal vergrößert.
Eine viel größere Zahl von Zellen kann auf der gleichen Fläche untergebracht werden, wenn die Zellen sich senkrecht zur Flächenausdehnung des Epithels verlängern; hierdurch wird auch die der freien Oberfläche zugewandte Zellfläche bedeutend verkleinert; zumeist sind diese Epithelformen (sog. zylindrische oder prismatische Epithelien) an solchen Stellen ausgebildet, wo einerseits ein Stoffaustausch notwendig, anderseits die Zellen vermehrten mechanischen (Respirationstraktus, Darmtraktus (Fig. 23), Nebenhoden) oder chemischen (Drüsenausführungsgänge) Reizen ausgesetzt sind. Damit mag im Zusammenhang stehen, daß wir gerade bei prismatischen Epithelien vielfach besondere Schutzanpassungen an der freien Oberfläche (s. u.) und außerdem Anzeichen für eine relativ rasche Abnutzbarkeit der Epithelzellen vorfinden.
Verschiedene Umstände müssen zusammengewirkt haben, um Epitheldecken zu bilden, die aus mehreren Schichten von Zellen bestehen (mehrschichtige Epithelien) vermehrte mechanische (Oberhaut, Mundhöhle, Ösophagus, Vagina u. a.) oder chemische Reize (untere Harnwege), vermehrte Gefahr der Austrocknung mögen dafür verantwortlich zu machen sein.
In mehrschichtigen Epithelien steht nur die basale Zellschichte mit dem angrenzenden Gewebe in Verbindung. Die oberen Zellschichten hängen nur unter sich und mit der basalen zusammen.
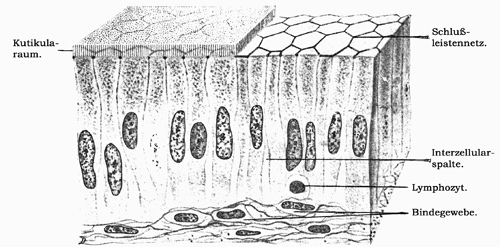
Fig. 23.
Epithel des Dünndarms der Maus, prismatisches Epithel, halbschematisch. In der rechten Hälfte der Figur ist der Kutikularsaum weggelassen, um das Schlußleistennetz zur Darstellung zu bringen. 1000mal vergrößert. Technik Nr. 10, S. 90.
Wahrscheinlich sind die geschichteten Epithelien, wenn nicht besondere Einrichtungen hinzutreten, weniger durchlässig für Wasser und gelöste Stoffe als einschichtige; anderseits sind die oberflächlichsten Zellen solcher Epithelien durch ihre größere Entfernung von der ernährenden Unterlage meist schlechter ernährt, so daß sie leicht absterben. Ersatz für sie liefert immer die basal gelegene Schichte (Keimschichte des Epithels). Die absterbenden Zellen der Oberfläche werden in vielen Fällen in besonderer Weise nutzbar gemacht (Verhornung), (s. u. Haut).
An allen einschichtigen Epithelien sind drei funktionell verschieden beanspruchte Zellflächen unterscheidbar: 1. die basale Fläche, die der Befestigung dient und gleichzeitig zusammen mit 2. den Seitenflächen für den Stoffaustausch der Epithelzellen in Betracht kommt, 3. die freie Oberfläche, die die mannigfachsten Differenzierungen erkennen läßt und so die Eigenart jeder Epithelform am deutlichsten zum Ausdruck bringt.
Bei mehrschichtigen Epithelien betrifft die für die Funktion wichtige Umwandlung der freien Oberfläche die Zellen der obersten Lagen im ganzen Umfange, während die tieferen Zellen ihren undifferenzierten Charakter bewahren.
Die Ernährung der Epithelzellen verlangt eine möglichst umfangreiche Angrenzung der Zellen an die vom Gewebssaft durchtränkte Unterlage. Diese ist bei platten Zellen ohne weiteres gegeben. Je kleiner die basale Zellfläche wird (kubische, prismatische Zellen), um so stärker müssen die Seitenflächen der Zellen vom Gewebssaft umspült werden. Bei prismatischen Epithelien sind deshalb meist deutliche, wenn auch feine Interzellularspalten vorhanden, die von feinen zytoplasmatischen Interzellularbrücken durchsetzt werden. Diese Spalten werden bei mehrschichtigen Epithelzellen besonders weit und nun deutlich erkennbar, weil hier die oberen Zellenlagen in ihrem ganzen Stoffwechsel auf die in den Spalten vorhandene Gewebslymphe angewiesen sind. Damit diese nach außen nicht abfließen kann, sind die Interzellularspalten nach der freien Oberfläche zu durch sogenannte Schlußleisten abgeschlossen, die, aus dichter Substanz bestehend, anscheinend einen festen Abschluß gewähren. Von der Fläche gesehen, bilden die Schlußleisten ein feines Netzwerk, das kleine, den Zellumrissen entsprechende Polygone umschließt. Bei vielschichtigen Epithelien wird ein Abfluß der Gewebslymphe vielfach durch die umgewandelten oberen Zellagen verhindert, ohne daß ein besonderes Schlußleistensystem zur Ausbildung gelangt.
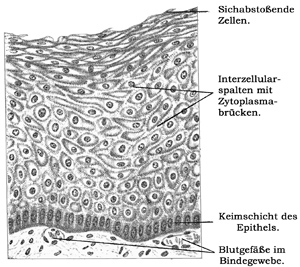
Fig. 24.
Mehrschichtiges Plattenepithel der Vagina. 240mal vergrößert. Technik Nr. 11, S. 90.
Das Epithelgewebe besitzt, mit verschwindenden Ausnahmen, keine eigenen Blutgefäße, ist also einzig und allein auf den Lymphstrom angewiesen. Trotzdem kommt das Nahrungsbedürfnis der verschiedenen Epithelgewebe oft sehr deutlich in der Anordnung der Blutgefäße, die bis an die Epithelbasis heranreichen, zum Ausdruck, da Nahrungsstoffe nur auf dem Blutwege in die Gewebssäfte gelangen können.
Die Haftung der Epithelien auf der Unterlage wird durch direkte Zellverbindungen gewährleistet. Diese sind bei vielen geschichteten Epithelien nicht nur bei den Epithelzellen unter sich nachzuweisen, sondern auch nach dem Gewebe der Unterlage (dem sog. Bindegewebe) zu. In vielen Fällen bilden sich Grenz- oder Basalmembranen, mit deren Hilfe die Haftung der Epithelien vervollkommnet wird. Solche Membranen sind sowohl mit den Epithelzellen wie mit dem Stützgewebe verbunden und an deren Grenze vermutlich durch Anteilnahme beider entstanden.
Die freie Oberfläche der Epithelien zeigt die allergrößte Mannigfaltigkeit und bringt die Anpassungsfähigkeit der Zelle wie kaum eine andere Gewebsform zum Ausdruck, selbst wenn wir uns auf die für den menschlichen Organismus wichtigen Möglichkeiten beschränken. Schutzanpassungen spielen hier die größte Rolle. Je nach den besonderen Aufgaben des Epithels wird der Schutz ganz verschiedenartig gewährleistet.
Im einfachsten Falle bildet sich eine Krusta aus; sie dürfte stets eine herabgesetzte Durchlässigkeit verursachen.
Unter Krusta versteht man eine derbere Grenzschichte des Zytoplasmas, welche — wie z. B. die nach innen nicht scharf abgesetzte Brotkruste — allmählich in das weichere Zytoplasma übergeht.
Das Fehlen solcher Oberflächenverdichtungen in stark durchströmten Epithelien (Hauptstückepithelien der Niere [s. Fig. 289], Synzytium der Plazenta [s. Fig. 322]), gibt der Zelloberfläche oft ein gestreiftes Aussehen (Bürstensaum). Kombiniert sich die Notwendigkeit einer starken Durchströmung mit dem Schutzbedürfnis gegen mechanische Schädigung, so kommt es zur Bildung eines von Poren durchsetzten Kutikularsaumes (Dünndarmepithel). Durch die Poren dieses Saumes können dünne Zytoplasmafortsätze herausgestreckt und wieder eingezogen werden.
Schutz kann aber auch durch konstante, fadenförmige Anhänge geliefert werden (Stereozilien[62]) im Nebenhodenepithel (s. Fig. 304) oder endlich durch bewegliche solche Anhänge (Zilien und Flagellen[63]). Mit ihrer Ausbildung sind in der Regel auch bestimmte zytoplasmatische Veränderungen (Basalkörperchen, innere Fadengerüste) verknüpft.
Die Basalkörperchen sind feinste Zytoplasmaverdichtungen, die auf der Zelloberfläche an der Basis jedes Wimperhärchens liegen. Sie sollen das motorische Zentrum der Geißeln sein. Die Wimpern schlagen geordnet meist in der Richtung nach der Außenwelt zu, so daß sie kleine eingedrungene Verunreinigungen (der Atmungsluft z. B.) aufzuhalten und wieder hinaus zu befördern imstande sind (s. Technik Nr. 12, S. 90).
Die obersten Lagen mehrschichtiger Epithelien gehen andauernd zugrunde; so findet man im Speichel, Harn, Vaginalsekret platte Zellen mit allen Veränderungen, die für abgestorbene Zellen typisch sind. In Anpassung an die austrocknende Wirkung der Luft bilden sich platte Zellen zu Hornsubstanz um. Ähnliche Prozesse führen zur Ausbildung spezifischer Bildungsprodukte des Oberhautepithels (Haare, Nägel, Federn), auf die an dieser Stelle nur kurz hingewiesen werden kann.
Die Charakterisierung der Epithelien nach ihrer Zusammensetzung aus Zellen bereitet in den einfacher gefärbten Präparaten manchmal Schwierigkeiten, da die Zellgrenzen besonders in dünneren Epithelien nicht deutlich erkennbar sind. Hier helfen einmal Isolationen (s. S. 12) oder eine spezifische Färbung (s. S. 40) der Zellgrenzen. Für die allermeisten Fälle genügt es, auf die Form der Zellkerne zu achten, da diese sich derjenigen des Zelleibes anpaßt; platte Zellen haben in der Regel linsenförmige, kubische Zellen kugelförmige, prismatische Zellen ovoide bis spindelförmige Zellkerne. Speziell in geschichteten sog. Plattenepithelien sind gewöhnlich die oberen Zellen abgeflacht, die mittleren äquidimensional, während die basalen Zellen prismatische Formen besitzen.
Man unterscheidet der Form nach:
I. einschichtige Epithelien:
a) Plattenepithel (s. Fig. 22) (in Teilen von Drüsenausführungsgängen, in Bowmanschen Kapseln der Nierenglomeruli, Lungenalveolen, Teilen des Gehörorgans, Gefäßen, lymphatischen Spalträumen, serösen Höhlen).
b) Kubisches Epithel (s. Fig. 21) (in Teilen des Urogenitalsystems, vieler Drüsen, des Zentralnervensystems, der Sinnesorgane).
c) prismatisches Epithel (s. Fig. 23) (im Darmtraktus, in Drüsenausführungsgängen, in Teilen des Zentralnervensystems der Sinnesorgane, des Urogenitalsystems).
Einschichtige Epithelien mit einer oder mehreren konstant anzutreffenden Reihen von Ersatzzellen nennt man mehrreihige Epithelien (s. Fig. 25 u. 27). Diese sind eine Abart der einschichtigen prismatischen Epithelien (Respirationstraktus, Ductus epididymidis).
II. Mehrschichtige Epithelien:
a) Mehrschichtiges prismatisches Epithel, dessen oberste Lage durch prismatische Zellen gebildet wird (Fornix conjunctivae, Teile von Drüsenausführungsgängen). Zum Unterschied von den mehrreihigen Epithelien grenzt hier die oberste Zellage nicht an das Bindegewebe an.
b) Mehrschichtiges Plattenepithel (s. Fig. 24), dessen oberste Lage von Plattenzellen gebildet wird (Haut, Anfangsteil des Darmtraktus, Stimmband, Teile des Urogenitalsystems).
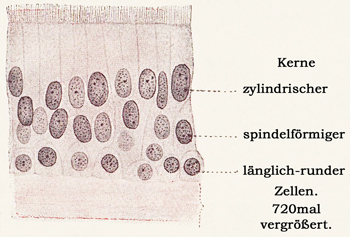
Fig. 25.
Mehrreihiges Flimmerepithel der Reg. respiratoria des Menschen. Technik Nr. 110.
Die besondere Anpassung an die wechselnde Wandausdehnung in Harnblase und Ureter bedingt ein sehr verschiedenes Aussehen ihres Epithels in gedehntem und ungedehntem Zustande (Fig. 295). Die basalen Zellen ordnen sich bei der Dehnung in wenige Schichten, beim Nachlassen der Dehnung in viele Schichten übereinander, während die zweikernigen Deckzellen ungedehnt mehr kubisch, gedehnt abgeplattet erscheinen. Man hat diesem Epithel den wenig passenden Namen „Übergangsepithel“ gegeben.
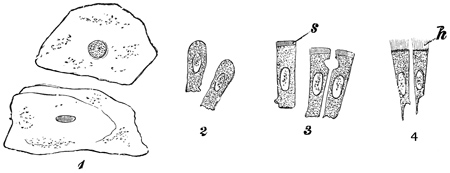
Fig. 26.
Epithelzellen des Kaninchens isoliert. 560mal vergr. 1. Plattenzellen (Mundschleimhautepithel), Technik Nr. 119. 2. Zylinderzellen (Kornealepithel). 3. Zylinderzellen mit Kutikularsaum s (Darmepithel). 4. Flimmerzellen, h Wimpern (Bronchusepithel). Technik nach S. 12, § 3a.
Die Lage an der Oberfläche macht die Epithelzellen besonders geeignet, äußere Reize aufzunehmen und sie für den Körper nutzbar zu machen. Diese ursprünglich wohl allen Epithelzellen eigene Fähigkeit wird von einzelnen besonders ausgebildet, wodurch wiederum mannigfache Formänderungen entstehen. Wir bezeichnen solche hochspezialisierte Zellen als Sinneszellen (s. unter Sinnesorgane). Viele, ja die meisten reizaufnehmenden und reizübertragenden Zellen haben aber ihre Lage im Oberflächenepithel eingebüßt und sind in geschützteren Lagen des Körpers zu größeren Massen vereinigt; sie bilden so das Nervengewebe. Zur Reizaufnahme sind nunmehr in den Oberflächenepithelien nur noch feine fadenartige Ausläufer dieser Zellen zurückgeblieben, die hier in der verschiedensten Weise zwischen den Epithelzellen endigen (s. intraepitheliale Nervenendigungen).
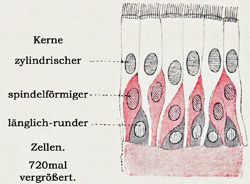
Fig. 27 (s. a. Fig. 25).
Schema eines mehrreihigen Epithels.
Von den Stoffwechselvorgängen in den Epithelzellen gibt uns das Aussehen von Zytoplasma und Zellkern vielfach gewisse Vorstellungen. Vor allem werden viele Substanzen, die die Zellen durchsetzen, vorübergehend im Zytoplasma gespeichert. Ob hierzu in allen Fällen besondere Zellorgane (Plasmosomen[64]), Granula notwendig sind, wie viele Autoren annehmen, oder ob die Substanzen in zytoplasmafreie Hohlräume (Vakuolen) deponiert werden, also paraplasmatische Stoffe sind, wie andere annehmen, ist nicht bestimmt zu sagen. In den meisten Fällen finden wir solche Substanzen (Fett, körpereigene und -fremde Farbstoffe, Eiweißsubstanzen, Glykogen u. a.) in tropfiger oder körniger Form im Zytoplasma vor und nennen diesen Vorgang Speicherung. Die Speicherung ist ein wichtiger Vorgang und dürfte in Epithelzellen ein wesentlicher Faktor für die Entstehung vieler „Granula“ sein, deren Natur wir nicht näher bestimmen können. Speicherungsvorgänge sind es auch, die uns oft bei resorbierenden Epithelien davon Kunde geben, daß bestimmte Substanzen von den Zellen aufgenommen worden sind. Der Vorgang der Resorption (z. B. aus dem Dünndarmlumen) läßt sich aber nicht als Speicherung allein charakterisieren; vielmehr gehört zu seinem Wesen, daß Substanzen aus dem Darminnern durch die Epithelschicht in die Körpersubstanz aufgenommen werden. Über die Einzelheiten dieses Vorganges sind wir nicht unterrichtet.
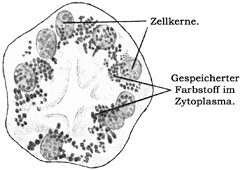
Fig. 28.
Querschnitt durch das Hauptstück eines Nierenkanälchens der weißen Maus, welches Farbstoff gespeichert hat (nach W. v. Möllendorff 1915). Technik Nr. 13, S. 90.
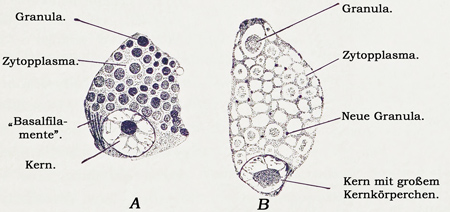
Fig. 29.
Zwei seröse Drüsenzellen aus der Gl. submaxillaris eines Meerschweinchens. 1260mal vergr. In der Zelle (B) sind die Granula in den unfärbbaren Zustand übergegangen, neue färbbare Granula beginnen sich im Zytoplasma zu bilden. Technik Nr. 121.
Grundsätzlich, wenn auch morphologisch im Einzelfall nicht immer deutlich, davon zu unterscheiden ist die sogenannte Sekretion, d. h. die Abscheidung von Substanzen aus dem Zellinnern nach der Zelloberfläche; auch sie spielt im Körper eine sehr wichtige Rolle.
Im übertragenen Sinne bezeichnen wir als Sekretion jede Abscheidung aus dem Körper, sofern sie demselben einen erkennbaren Nutzen bringt; hierbei braucht das Sekret nicht immer die Zellen zu verlassen, sondern kann durch den Untergang der ganzen Zelle nutzbar gemacht werden. Im Gegensatz dazu bezeichnet man als Exkret ein Abscheidungsprodukt, das für den Organismus keinen erkennbaren Nutzen mehr besitzt. Doch ist in manchen Fällen die Entscheidung, ob wir es mit einem Sekret oder mit einem Exkret zu tun haben, nicht leicht zu treffen.
Wenn auch der Vorgang der Speicherung eine gewisse morphologische Ähnlichkeit mit vielen Sekretionsvorgängen besitzt, so muß er unseres Erachtens scharf von ihnen unterschieden werden, weil sonst der Begriff des Sekretes zu weit gefaßt und endlich inhaltslos würde.
Zellen, die eine deutliche Sekretionstätigkeit entfalten, nennen wir Drüsenzellen. Die bei Bildung und Ausscheidung des Sekretes sich abspielenden Vorgänge sind häufig an gewissen Verschiedenheiten an Form und Inhalt der Drüsenzellen zu erkennen, welche den sekretleeren und sekretgefüllten Zustand der Zelle anzeigen.
Die Bezeichnungen „sekretleer“ und „sekretgefüllt“ beziehen sich auf das fertige, der Ausstoßung nahe Sekret, nicht auf die Vorstufen desselben; andere Autoren verwenden dafür die Ausdrücke „ruhend“ und „tätig“, die sich indessen nicht vollkommen mit ersteren decken. Die Physiologie nennt eine solche Drüse „ruhend“, welche kein Sekret abgibt, „tätig“ aber, solange Sekret aus den Ausführungsgängen abfließt.
Bei vielen, z. B. den sogenannten serösen Drüsenzellen, äußert sich der sekretleere Zustand neben gewissen Erscheinungen am Kern durch ein geringeres Volum und ein dunkleres Aussehen der Zelle.
Es ist zweifellos, daß auch aus dem Kern Teile in Form färbbarer Körnchen in das Zytoplasma übertreten, ob aber diese Teile als echte Sekretgranula aufgefaßt werden dürfen, ist nicht sicher. Wir betrachten die Kernveränderungen bei der Sekretion als ein Zeichen seiner Anteilnahme am Zellstoffwechsel, ohne daß wir die Rolle, die der Kern hierbei spielt, genauer abzugrenzen vermögen.
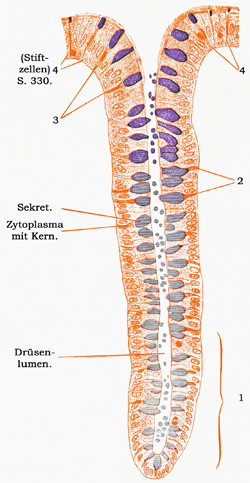
Fig. 30.
Darm- (Lieberkühnsche) Drüse aus einem Schnitte durch den Dickdarm des Menschen, 165mal vergr. Das in den Becherzellen gebildete Sekret ist dunkelblau gefärbt. In der Zone 1 sieht man Becherzellen im Anfang der Sekretbildung; daß Sekret hier schon ausgestoßen wird, geht aus dem Vorhandensein von Sekrettröpfchen im Lumen der Drüse hervor; 2 Becherzellen mit viel Sekret; 3 Becherzellen, in denen schon weniger Sekret vorhanden ist; 4 absterbende Becherzellen, die zum Teil noch einen letzten Rest Sekret enthalten. Technik Nr. 131.
Stärkere Vergrößerungen und besondere Methoden zeigen Körnchen, die sich intensiv färben lassen (Fig. 29a). Diese „Granula“ wachsen, verlieren die Fähigkeit, sich zu färben (Fig. 29b) und wandeln sich zu Sekrettropfen um; damit ist die Zelle in den sekretgefüllten Zustand übergegangen, der sich auch bei einfacheren Methoden durch ein vermehrtes Volum und ein helleres Aussehen anzeigt. Die Sekrettropfen, zuweilen schon die Granula, werden an der freien Zelloberfläche ausgestoßen. Die speziellen Vorgänge in vielen anderen Drüsenzellen werden wir im speziellen Teil noch kennen lernen.
Die in manchen serösen Drüsenzellen und den Hauptzellen der Magendrüsen befindlichen Basalfilamente („Ergastoplasma“) sind vielleicht Teile der Filarsubstanz, gehören vielleicht zu den Plastosomen (S. 59), vielleicht hängen sie aber auch mit der Bildung des Sekrets zusammen, sind Ausdruck endoplasmatischer Ströme. Nach der Ansicht vieler Autoren sollen die Sekretgranula aus Plastosomen entstehen.
Die meisten Drüsenzellen gehen beim Sekretionsakte nicht zugrunde, sondern sind imstande, denselben Prozeß mehrfach zu wiederholen. Solche Drüsenzellen sind merokrin[65] im Gegensatz zu holokrinen[66] Drüsenzellen, deren Zelleib unter einer spezifischen Umwandlung zugrunde gehen muß, um als Ganzes Sekret zu werden (Talgdrüsen).
Die Drüsenzellen liegen in vielen Fällen zwischen indifferenten oder in anderer Richtung spezialisierten Epithelzellen angeordnet (Fig. 30); wird aber der Bedarf nach einem Sekret größer, so werden mehr oder weniger große Mengen von Epithelzellen unter die Epitheloberfläche verlagert und wandeln sich zu Drüsenzellen um: es kommt damit zur Ausbildung von Drüsen. Die Vergrößerung der sezernierenden Oberfläche, die geschützte Lage der Drüsenzellen sind die Hauptvorteile, die durch diese Entwicklung erreicht werden. In viel stärkerem Maße als nicht sezernierende Epithelien werden Drüsen mit Blutgefäßen (Fig. 31) versorgt, die allenthalben bis dicht unter die Epithelzellen hingelangen, von denen sie durch eine Membrana propria getrennt werden. Das Prinzip des Stofftransportes schaltet also hier ebenfalls die Drüsenzelle zwischen Blutgefäß und freie Oberfläche als regulierenden Faktor ein.
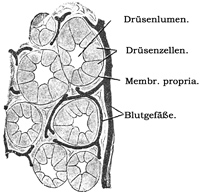
Fig. 31.
Stück eines Durchschnitts einer Zungenschleimdrüse eines Kaninchens. Blutgefäße injiziert. Die Kerne der Drüsenzellen waren an dem Präparat nur undeutlich zu sehen. ca. 180mal vergrößert. Wie Technik Nr. 126.
Zuweilen finden sich zwischen Propria und Drüsenzellen sternförmige Zellen, welche miteinander sich verbindend als „Korbzellen“ die Drüsenröhrchen umgreifen; es ist noch nicht entschieden, ob dieselben Epithel- oder Bindegewebszellen oder glatte Muskelfasern sind.
Durch die Zusammendrängung der Epithelzellen auf einen engen Raum werden aber viele besondere Formbildungen notwendig. Die Epithelzellenoberfläche grenzt nunmehr an einen engen kanalartigen Hohlraum an, der mit der freien Oberfläche eines Hohlorganes oder mit der Oberfläche des Körpers in Verbindung steht (vgl. Fig. 20B, S. 76). Je nach der Art des bereiteten Sekretes sind die Hohlräume in den Drüsen fast unmeßbar fein oder weiter. Soweit der Hohlraum von richtigen Drüsenzellen umgeben wird, nennen wir ihn das Drüsenlumen, diesen Abschnitt der Drüse Endstück; zumeist nehmen nämlich die Epithelzellen, die dem Ausgang des Drüsenkanalsystems näher liegen, an der Sekretionsarbeit nicht teil. Wir bezeichnen deshalb diese Teile einer Drüse als Ausführungsgang.
Die komplizierte Zusammensetzung des Ausführungsgangsystems in manchen Drüsen macht die Annahme notwendig, daß auch die Epithelzellen bestimmter Teile desselben an der Sekretbereitung Anteil nehmen. Doch sind wir über die Art dieser Beteiligung nur ungenügend unterrichtet.
Bei vielen Drüsen gehen vom axialen (zentralen) Lumen feine Seitenzweige, Sekretkanälchen (weniger gut „Sekretkapillaren“) ab, die bald zwischen den Drüsenzellen („zwischenzellige Sekretkanälchen“), bald im Innern einer Drüsenzelle („binnenzellige Sekretkanälchen“) gelegen sind. Sie sind nur durch besondere Methoden sichtbar zu machen und erscheinen dann bald in Form einfacher, bald verästelter, unter Umständen sogar netzförmig verbundener Kanälchen (Fig. 32), die nicht bis zur Membrana propria und nicht bis zu den Blutgefäßen reichen, sondern von diesen wenigstens durch ein Stück einer Drüsenzelle getrennt sind.
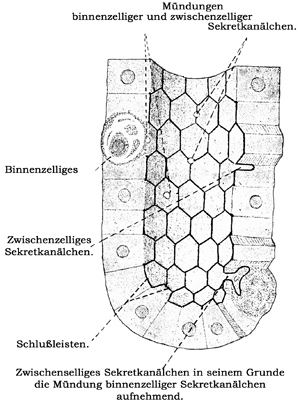
Fig. 32.
Schematisches Modell einer menschlichen Fundusdrüse.
Der Nachweis, ob Sekretkanälchen zwischen- oder binnenzellig sind, ist nicht leicht. Bei quergeschnittenen Sekretkanälchen werden binnenzellige stets von den Zellgrenzen entfernt, zwischenzellige dagegen stets in den Zellgrenzen bzw. an dem Treffpunkt mehrerer Zellgrenzen liegen. Noch bessere Entscheidung gestattet das Verhalten der Schlußleisten. Zwischenzellige Sekretkanälchen sind auf dem Querschnitt von mindestens zwei Schlußleistenquerschnitten begrenzt, auf dem Längsschnitt sieht man ebenfalls die Schlußleisten der Wand der Kanälchen entlang verlaufen (Fig. 32). Binnenzellige Sekretkanälchen lassen keinerlei Beziehung zu Schlußleisten erkennen.
Zwischenzellige Sekretkanälchen finden sich in den serösen Drüsen der Zunge, in der Parotis, in den serösen Abschnitten der Submaxillaris, der Sublingualis und verwandter Drüsen, in den Bulbourethraldrüsen, in der Tränendrüse und in den Pylorusdrüsen. Zwischenzellige und binnenzellige Sekretkanälchen kommen nebeneinander in den Knäueldrüsen, in der Leber und in den Gland. gastricae propriae vor. Es ist wahrscheinlich, daß die binnenzelligen Sekretkanälchen nur vorübergehende Bildungen sind.
Sekretkanälchen scheinen den reinen Schleimdrüsen, den schleimproduzierenden Abschnitten der gemischten Drüsen, den Darm-, Duodenal- und Uterusdrüsen, der Schilddrüse, der Hypophyse und der Niere zu fehlen.
Alle Drüsen, bei denen das Sekret durch Ausführungsgänge an eine Oberfläche befördert wird, nennen wir offene oder exokrine Drüsen. In Gegensatz dazu kennen wir eine Reihe von wichtigen, ebenfalls vom Epithelgewebe abzuleitenden Drüsen, die mit keiner Oberfläche des Körpers in Zusammenhang stehen, dabei aber doch nachweislich sezernieren. Ihr Sekret muß auf dem Blut- oder Lymphwege aus den Drüsen weggeführt werden; deshalb bezeichnen wir sie als innersekretorische oder endokrine Drüsen (Schilddrüse, Nebenniere, Thymus, Hypophyse u. a.).
Häufig mißt man vielen Körperbestandteilen eine endokrine Funktion zu, ohne dafür genügende Beweise beizubringen. Wir legen zunächst Wert auf den Teil der gegebenen Definition, daß die betreffenden Organe epithelialer Natur sein müssen, obgleich zuzugeben ist, daß genauere Kenntnis tatsächlich auch bei anderen Geweben gewisse der Sekretion nahestehende Prozesse aufdecken kann. Das ist aber bis heute nicht geschehen.
Bei manchen endokrinen Drüsen besteht noch ein Lumen, das aber allseitig von Epithel umschlossen ist (Schilddrüse, Teile der Hypophyse).
Die Schilddrüse und die Hypophyse bilden insofern einen Übergang von den exokrinen zu den endokrinen Drüsen, als sie in embryonaler Zeit einen Ausführungsgang besitzen, der jedoch im Laufe der Entwicklung schwindet. In dieser Beziehung ist der Schilddrüse die Thymusdrüse verwandt, deren sekretorische Epithelzellen jedoch bald undeutlich werden. Bei den anderen endokrinen Drüsen erscheint meist gleich bei der ersten Anlage der lumenlose Zustand der Epithelien.
Bei vielen endokrinen Drüsen besteht das Drüsengewebe nur noch aus soliden Epithelsträngen, die miteinander anastomosierend ein von Blutgefäßen umsponnenes Netzwerk bilden (Epithelkörperchen der Schilddrüse, Hypophyse, Rindenschicht der Nebenniere, intertubuläre Zellhaufen des Pankreas, Corpus luteum?). Die endokrine Natur der sogenannten interstitiellen Zellen des Hodens (sogenannte Leydigsche Zellen) und des Ovariums (sogenannte Pubertätsdrüse) können wir nicht anerkennen.
In manchen Drüsen (z. B. Pankreas) sind exokrine und endokrine Anteile dicht zusammengelagert.
Die Formen, die die epithelialen Anteile der offenen Drüsen darbieten, sind sehr mannigfaltig und sind sicherlich durch die spezielle Funktion der Drüsen in wesentlichem Maße bestimmt, ohne daß wir im einzelnen die Faktoren für die Wahl solcher Formen kennen. Nach der Gestalt des Lumens haben sie entweder die Form von Röhren, Tubuli, oder bauchigen Säckchen, Alveoli[67]. Man unterscheidet danach zwei Hauptformen: tubulöse und alveoläre Drüsen; da aber auch bei den tubulösen Formen durch die verschiedene Höhe der Epithelzellen Dickenunterschiede in den Einzelabschnitten vorkommen, ist es zweckmäßig hier neben dem Lumen auch die äußere Form zu beachten. Wir zweigen deshalb von der großen Zahl der tubulösen Drüsen die sogenannte tubuloazinösen Drüsen ab; bei ihnen sitzen den Enden des röhrenförmigen Gangsystems, von außen betrachtet, kugelig bis kolbig verdickte Azini (= Beeren) auf. Zum Unterschiede vom Alveolus ist also beim Azinus nur die äußere Gestalt verdickt und zwar durch die Zunahme der Epithelzellenhöhe; das Lumen des Acinus ist dagegen ebenso eng wie dasjenige des unmittelbar anschließenden Gangabschnittes[68].
Die letztgenannte Form ist sehr oft in tubulösen Drüsen zu finden, die eine starke Verzweigung ihres Gangsystems erkennen lassen.
Als Zwischenformen des tubulösen und alveolären Typus können dagegen solche Drüsen bezeichnet werden, deren Lumen in den Endkammern bauchig erweitert ist; solche Drüsen bezeichnen wir als tubulo-alveoläre.
A. Tubulöse Drüsen.
1. Tubulöse Einzeldrüsen, welche entweder die Gestalt einfacher (Fig. 33) oder verästelter (Fig. 34) Röhren haben; letztere Form können wir ein Röhrensystem nennen.
Unverästelte (einfache) tubulöse Einzeldrüsen sind: ein Teil der Magen- (Fundus-)drüsen, die meisten Knäuel- und Ohrschmalzdrüsen und die Intestinal- (Lieberkühnschen) Krypten (über letztere siehe Kap. Darm).
Verästelte tubulöse Einzeldrüsen sind: ein Teil der Fundusdrüsen, einzelne Knäueldrüsen und die Uterindrüsen.
2. Tubulöse zusammengesetzte Drüsen; sie bestehen aus einer verschieden großen Anzahl von Röhrensystemen (Fig. 38).
Tubulöse zusammengesetzte Drüsen sind die serösen Zungendrüsen, die serösen Abschnitte der kleinen Drüsen des Respirationsapparates (und der kleinen Mundhöhlendrüsen?) und die Tränendrüsen. Ferner die Nieren, sowie Hoden und Leber. Die Verästelungen der beiden letzteren Drüsen anastomosieren regelmäßig miteinander und bilden Netze; man nennt deshalb Hoden und Leber auch „retikuläre Drüsen“. Einzelne Anastomosen zwischen Drüsen sind an den Fundusdrüsen des Pferdes und an den serösen Zungendrüsen und den Bulbourethraldrüsen des Menschen beobachtet worden.
Unter die verzweigten tubulösen Drüsen können auch die kleinen Schleimdrüsen die Zunge, des Gaumens, der Speiseröhre gerechnet werden, wenngleich die Enden hier leichte bauchige Erweiterungen zeigen. In komplizierterer Form zeigen diesen Typus auch die großen schleimigen Speicheldrüsen (Sublingualis, Teile der Submaxillaris, Drüsen des Respirationstraktus wie der Mundhöhle), Gl. duodenales, bulbourethrales. Bezüglich der Speicheldrüsen machen es neuere Erfahrungen wahrscheinlich, daß ihnen allen als Ausgangsform der tubulo-azinöse Typus zugrunde liegt.
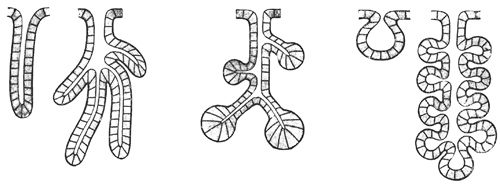
Fig. 33. Fig. 34. Fig. 35. Fig. 36. Fig. 37.
Einfache Verästelte Verästelte Einfache Verästelte
tubulöse tubuloazinöse alveoläre
Einzeldrüse (Schema).
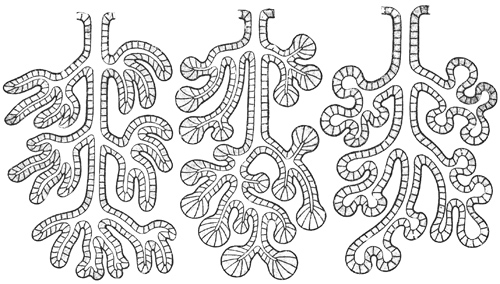
Fig. 38. Fig. 39. Fig. 40.
Tubulöse Tubuloazinöse Alveoläre
zusammengesetzte Drüse (Schema).
B. Tubulo-azinöse Drüsen.
In der typischen Form (verzweigtes Röhrensystem mit anliegenden Endbeeren) zeigen diesen Typus die serösen Speicheldrüsen (Parotis, Teile der Submaxillaris,) die Tränendrüse und das Pankreas. Im einzelnen bestehen große Verschiedenheiten.
C. Alveoläre Drüsen.
Einfache (Fig. 36) oder verästelte (Fig. 37), einen Ausführungsgang besitzende bauchige Säcke; die verästelte Form heißt Alveolensystem.
Unverästelte alveoläre Einzeldrüsen sind die kleinsten Talgdrüsen.
Verästelte alveoläre Einzeldrüsen sind die größeren Talgdrüsen und die Tarsal-(Meibomschen)Drüsen.
D. Tubulo-alveoläre Drüsen.
Verzweigte Röhrensysteme, an deren Ende einfache oder verzweigte Endkammern sitzen, deren Lumen ausgebaucht ist. Diesen Bauplan besitzen die Milchdrüse, die Lunge, in modifizierter Form auch die Prostata.
Bei den meisten, vorzugsweise bei den mit unbewaffnetem Auge sichtbaren Drüsen wird von seiten des umgebenden Bindegewebes eine Hülle gebildet, welche Scheidewände, Septa, in die Drüse sendet und so dieselbe in verschieden große Komplexe, Drüsenläppchen teilt. Die Septa sind die Träger der größeren Blutgefäße und Nerven.
Technik.
Nr. 10. Schlußleisten. Darm, Niere und andere (Stückchen von 0,5-1 cm Länge) werden in Chromosmium-Essigsäure (S. 17) oder in Sublimatkochsalzlösung (S. 16) fixiert, nach dem Härten (S. 17) in Paraffin eingebettet; mit dem Mikrotom angefertigte dünne (ca. 10 µ) Schnitte werden aufgeklebt (siehe Mikrotomtechnik), mit M. Heidenhains Eisenlackmethode (S. 40) gefärbt und in Xylolbalsam eingeschlossen. Die Leisten sind als schwarze Striche (bzw. Punkte) schon mit guten Trockensystemen zu sehen (Fig. 21, 23). An solchen Präparaten kann man mit Immersionssystemen auch die Zentralkörperchen sehen, doch wird deren Auffinden nur Geübten gelingen.
Nr. 11. Für die Untersuchung der meisten Epithelien genügen die zur Organfixierung viel verwandten Konservierungsflüssigkeiten (Zenker, Müller-Formol u. a., s. S. 16). Man bettet in Paraffin, Zelloidin-Paraffin oder Zelloidin (S. 22ff.) ein und färbt mit Hämatoxylin und Eosin (s. S. 41) oder Eisenhämatoxylin (S. 40).
Nr. 12. Lebende Flimmerzellen erhält man, wenn man einen Frosch tötet, (S. 11), ihn auf den Rücken legt und mit einer Schere den Unterkiefer abschneidet. so daß das Dach der Mundhöhle frei vorliegt. Von der Schleimhaut dieses Daches schneide man mit einer feinen Schere einen schmalen, ca. 5 mm langen Streifen ab, bringe ihn in einigen Tropfen Kochsalzlösung auf den Objektträger und bedecke ihn mit einem Deckglase. Bei schwacher Vergrößerung wird nun der Neuling kaum etwas wahrnehmen, wenn nicht Strömungen, in denen die großen Blutzellen schwimmen (Fig. 98), ihn auf die richtige Stelle leiten; man nehme deshalb starke Vergrößerung und suche die Ränder des Präparates ab. Im Anfang ist die Bewegung der Flimmerhaare noch so lebhaft, daß der Beobachter die einzelnen Haare nicht sieht, der ganze Haarsaum wogt; man hat das Bild passend mit einem vom Winde bewegten Kornfelde verglichen; nach wenigen Minuten schon nimmt die Schnelligkeit ab, die Härchen werden deutlich. Ist die Bewegung erloschen, so kann man sie vermittelst Durchleiten (S. 47) eines Tropfens konzentrierter Kalilauge von neuem anfachen; der Effekt ist jedoch ein kurz vorübergehender, so daß das Auge des Beobachters während des Durchleitens das Okular nicht verlassen darf. Wasserzusatz hebt die Flimmerbewegung bald auf.
Nr. 13. Speicherung in Nierenzellen. Man injiziert einer weißen Maus subkutan 1 ccm einer 1%igen Lösung von Trypanblau (bei Hollborn, Leipzig zu beziehen). Nach 24-30 Stunden erkennt man in der zerzupften Nierenrinde des getöteten Tieres eine regelmäßige, tropfige Speicherung des Farbstoffes. Die andere Niere konserviere man in Formalin 10%ig (s. S. 14) 24 Stunden lang, wässere ebenso lange und färbe die Gefrierschnitte mit Alaunkarmin (s. S. 8). Die Schnitte werden dann durch Alkohol in Karbolxylol überführt und in Kanadabalsam eingeschlossen.
II. Stützgewebe.
Im Gegensatz zu den Epithelgeweben grenzt das Stützgewebe in der Regel nicht an freie Oberflächen an, sondern bildet einen Teil der Innensubstanz des Körpers, der die wichtigsten und verschiedenartigsten Aufgaben (Formgebung und -erhaltung, Stoffwechsel, vielleicht auch Reizübertragung) besitzt. Der Name „Stützsubstanzen“ bezeichnet die Eigenart nur eines Teiles der hierher gehörigen Gewebe.
Das Gemeinsame aller hier zusammengefaßten Gebilde liegt in ihrer Herkunft und Verwandtschaft, die bewirkt, daß durch bestimmte Beanspruchungen vielfach aus einer Form andere Formen dieser Gruppe entstehen können.
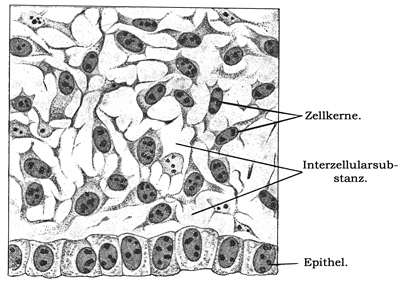
Fig. 41.
Embryonales Stützgewebe aus einem Schnitt durch einen sehr jungen Embryo vom Meerschweinchen; die Zellen bilden ein Plasmodium. Beachte den Unterschied der Stützsubstanz zum Epithel! 750mal vergrößert. Technik Nr. 14, S. 116.
Ontogenetisch entwickelt sich das Stützgewebe später als das Epithelgewebe; wir erkennen sein Auftreten daran, daß auf einer bestimmten Entwicklungsstufe des Keimes zwischen den Epithellagen Zellen angetroffen werden, die 1. zwar untereinander und mit den Epithelzellen ihre Verbindungen gewahrt haben, 2. aber durch relativ weite Zwischenräume voneinander getrennt werden.
Die Zellen bilden zunächst ein zusammenhängendes schwammartiges Gerüst (Plasmodium)[69]; in den dickeren, zytoplasmatischen Teilen des Gerüstes liegen die Zellkerne. Die in den Hohlräumen liegende Masse nennen wir Interzellularsubstanz (Grundsubstanz) (Fig. 41).
Sie ist im ersten Entwicklungsanfang von den die Interzellularspalten des Epitheles erfüllenden Gewebssäften prinzipiell sicher nicht unterschieden und muß bei der ersten Stützsubstanzbildung ebenfalls als flüssig angesehen werden. Ob sie von den Zellen ausgeschieden wird, wie die einen, oder vor den später in ihr liegenden Zellen entstanden ist, wie andere Autoren meinen, oder ob sie endlich nur ein durch seine Konsistenz vom Zytoplasma unterschiedenes Außenplasma darstellt, sei dahingestellt. Sicher bildet sie morphologisch von Anfang an einen gewissen Gegensatz zu den Zellen selbst.
Viele Erscheinungsformen des Stützgewebes werden durch Eigenschaften der Interzellularsubstanz bestimmt; wenn lockeres Bindegewebe weich dehnbar, aber relativ zugfest, wenn Knochen hart ist, stets ist die Interzellularsubstanz die Trägerin dieser Eigenschaften.
Alle weiter ausgebildeten Formen des Stützgewebes sind charakterisiert 1. durch das Verhalten der Zellen, 2. durch die Masse und die Differenzierungsweise der Interzellularsubstanz.
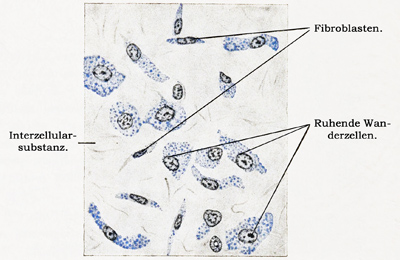
Fig. 42.
Fibroblasten und „Ruhende Wanderzellen“ im subkutanen Bindegewebe der Maus nach Speicherung von Trypanblau. 500mal vergrößert. Technik Nr. 15, S. 116.
Wenn auch mit Recht immer wieder darauf hingewiesen wird, daß wir der Interzellularsubstanz nicht das Leben absprechen dürfen, weil sich in ihr auch ohne unmittelbare Anteilnahme der Zellen Bildungsprozesse abspielen, so sehen wir doch eine Reihe wichtiger Lebensvorgänge, vor allem die erste Bildung der Stützsubstanzen an Zellverbände geknüpft und betrachten diese deshalb als Bildner der Stützsubstanzen und als diejenigen Bestandteile der ausgebildeten Gewebe dieser Gruppe, an die die wichtigsten Stoffumsetzungen gebunden sind.
In allen Formen des Stützgewebes liegen Stammzellen, die als unmittelbare Abkömmlinge des Plasmodiums zu betrachten sind; diese behalten ihre Zusammenhänge entweder mehr oder weniger deutlich bei und bilden die sogenannten Fibroblasten des lockeren Bindegewebes, die sogenannten Retikulumzellen (s. retikuläres Bindegewebe, S. 98), die Sehnenzellen (s. S. 101), Knochenzellen (s. S. 114), oder sie verlieren die plasmatischen Verbindungen und werden dann allseitig von Interzellularsubstanz umschlossen (Knorpelzellen, s. S. 107). Unmittelbare Umwandlungsformen aus dem Plasmodium sind auch die Fett- und die Pigmentzellen, die sich von den obengenannten, morphologisch mehr indifferenten Zellformen durch auffallende zytoplasmatische Einschlüsse unterscheiden. Alle diese Zellformen sind durch ihre (normalerweise) unveränderliche Lage im Innern der festeren Teile der Interzellularsubstanz ausgezeichnet.
Neben ihnen finden wir in den Stützgeweben, besonders in den saftreichen, weicheren (lockeres Bindegewebe, adenoides Gewebe der Lymphknoten und der Schleimhäute), verschiedenartige, sogenannte freie oder wandernde Zellen vor. Ihr Vorkommen unterliegt in den einzelnen Gewebsformen den größten Schwankungen; sie vermögen ihre Lage zu verändern, was sich in fixierten Präparaten an ihrer unregelmäßigen Form erkennen läßt. Besonders unter starken physiologischen und pathologischen Reizen kann ihre Zahl an einzelnen Gewebestellen stark zunehmen.
Die Herkunft und Bedeutung dieser Zellen ist nicht für alle Fälle geklärt. Wir unterscheiden:
a) Ruhende Wanderzellen (Maximow). Der Name „Ruhende Wanderzellen“ drückt aus, daß diese Zellen auf Reize hin Wanderungen ausführen können. In diese Gruppe fallen die Klasmatozyten[70] (Ranvier), die Adventitiazellen. Die Adventitiazellen sind „ruhende Wanderzellen“, die in den Außenschichten der Blutgefäße (T. externa oder adventitia) aufgefunden werden (Marchand); sie gehören zu der Gruppe der Histiozyten (Aschoff). Der Name Histiozyten = vom Gewebe stammende Zellen ist als Gegensatz zu Blutzellen (Leukozyten) gemeint. Beim Entzündungsvorgang reichern sich zahlreiche Zellen an, die teils dem Blute, teils den „Ruhenden Wanderzellen“ entstammen. Als „Bluthistozyten“ werden die losgelösten „ruhenden Wanderzellen“, Retikulumzellen (Milz, Lymphknoten, Knochenmark) und ebenfalls gelegentlich sich ablösende Kapillarepithelien bestimmter Organe (Leber) zusammengefaßt. Allen diesen Formen ist ein bedeutendes Speicherungsvermögen und die Loslösung aus dem Gewebsverband bei Reizzuständen gemeinsam.
Diese Zellen liegen in sehr großer Zahl im lockeren Bindegewebe aller Organe, besonders auch in der Umgebung der Blutgefäße. Sie dürften umgewandelte Formen der Fibroblasten sein und aus diesen dauernd während des ganzen Lebens entstehen. Sie sind durch ihr besonderes Speicherungsvermögen am besten zu charakterisieren.
Sie enthalten normalerweise in ihrem Zelleib mannigfaltige Einschlüsse; saure Farbstoffe, dem lebenden Organismus einverleibt, werden vom Zytoplasma dieser Zellen reichlich aufgenommen und gespeichert, während sich die Fibroblasten an diesem Vorgange weniger stark beteiligen. Auch gröbere Substanzen (Zelltrümmer, Bakterien usw.) nehmen sie auf, weshalb man sie oft auch als Makrophagen bezeichnet.
Die ruhenden Wanderzellen liegen offenbar den dünnflüssigen Teilen der Interzellularsubstanz (den sog. Saftspalten) dicht an, oder auch in ihnen darin, während die Fibroblasten von konsistenteren Teilen der Interzellularsubstanz umschlossen sind. Daher kommen alle das Stützgewebe durchsetzenden Substanzen zuerst mit den ruhenden Wanderzellen in Berührung und werden von ihnen intensiv aufgenommen. Bei reichlicher Beladung mit Speicherungssubstanzen lösen sich jeweils einzelne Zellen los und werden von Lymphstrom aus dem Gewebe weggeführt, gelangen in die Lymphbahn, die Lymphknoten und weiter in das Venensystem, wo sie dann gelegentlich angetroffen werden. Vermutlich gehen sie nun rasch zugrunde. Bei vielen pathologischen Fällen spielen diese Zellformen eine große Rolle.
Das Schicksal und die Fähigkeit, Fremdstoffe stark zu speichern, haben die ruhenden Wanderzellen mit den ihnen nahestehenden Retikulumzellen (s. adenoides Gewebe) in der Milz, den Lymphknoten, dem Knochenmark gemeinsam, die andererseits den Fibroblasten nahestehen, was wiederum auf die nahe Verwandtschaft aller dieser Zellformen hinweist.
b) Mastzellen (Fig. 43B) nennen wir charakteristische granulareiche Zellen, deren unregelmäßig gestaltetes Zytoplasma zahlreiche dichtgedrängte, rundliche Einschlüsse enthält. Diese lassen sich mit basischen Anilinfarben stark beladen, weshalb man sie basophil nennt (mit geeigneten Farbstoffen färben sie sich in einem vom gelösten Farbstoff abweichenden Tone, also metachromatisch). Ihre Herkunft (aus Blut- oder Gewebszellen) ist nicht sicher. Manche Forscher unterscheiden histogene und hämatogene Formen[71].
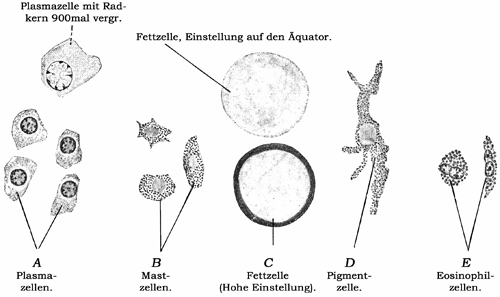
Fig. 43.
Zellen im Bindegewebe des Menschen. 560mal vergr. Technik Nr. 16, 17, 30, S. 116, 118.
In frühester embryonaler Zeit entstehen aus dem Plasmodium noch zweierlei später scharf vom Mutterboden unterschiedene Formbestandteile: die Gefäße und die zelligen Elemente des Blutes und der Lymphe (genauer s. unter Blut und Gefäße); besonders die zelligen Bestandteile der Lymphe, die verschiedenen Formen von Lymphozyten machen einen bedeutenden Teil der wandernden Zellen in den Stützsubstanzen aus. So kommen in verschiedener Menge
c) kleine Lymphozyten (über ihren Bau s. Blut) vor, während
d) die sogenannten Plasmazellen weniger regelmäßig angetroffen werden. Diese sind offenbar Umwandlungsformen der Lymphozyten, von denen sie sich durch den Umfang des Zytoplasmas unterscheiden. Sie liegen vorzugsweise in der Nähe kleiner Blutgefäße, sind basophil, ohne eine ausgesprochene Granulierung des Zytoplasmas, und haben einen einfachen, exzentrischen, von einem hellen Hof umgebenen Kern, dessen Chromatin in starken Brocken der Kernmembran anliegt: sogenannter Radkern (Fig. 43A). Sie sind nur ausnahmsweise Phagozyten[72]. Nur bei vermehrtem Stoffwechsel (während der Verdauung in der Darmwand, während der Schwangerschaft und der Menstruation in der Uteruswand, bei entzündlichen Vorgängen usw.) treten sie auf, so daß man annehmen kann, daß sie durch Speicherung bestimmter Substanzen heranwachsende Lymphozyten sind.
e) Endlich finden sich in Stützgeweben eine wechselnde Zahl sogenannter azidophiler Zellen (Fig. 43E) vor, deren Zytoplasmagranula sich vorzugsweise mit sauren Farbstoffen färben. Sie werden von vielen Autoren als identisch angesehen mit den entsprechend granulierten Formen der Blutzellen (azidophile Leukozyten).
Die Interzellularsubstanz, in den ersten Entwicklungsstufen rein flüssig, verfestigt sich unter dem Einfluß der Zellen teilweise und in den verschiedenen Formen des Stützgewebes in sehr wechselndem Umfang. Diese Verfestigung dürfte in erster Linie auf einer zunehmenden Konzentrierung an eiweißartigen Stoffen beruhen.
Den Einfluß der Konzentration auf die Festigkeit einer Eiweißstoffe enthaltenden Lösung können wir am Beispiel der Gelatine prüfen. Sie erstarrt bei einer bestimmten Temperatur erst dann zu einer Gallerte, wenn eine gewisse kritische Konzentration erreicht ist. Schwächere Lösungen bleiben bei der gleichen Temperatur zähflüssig, stärkere bedürfen zum Flüssigwerden einer noch höheren Temperatur.
Die Verfestigung betrifft in der Regel nicht die gesamte Interzellularsubstanz eines Stützgewebes. Vielfach wird diese Masse in Form von Lamellen schichtweise gebildet, so daß zwischen den Lamellen dünnflüssigere Spalten übrig bleiben; so kommt es, daß in vielen Stützgeweben die Möglichkeit besteht, daß freie Zellen sich in solchen flüssig gebliebenen Spalten der Interzellularsubstanz bewegen können; auch für die Diffusion gelöster Stoffe dürften diese Einrichtungen von größter Bedeutung sein (sogenanntes Saftspaltensystem).
Das Saftspaltensystem ist von sehr wechselnder Ausdehnung; es kann durch reichliche in ihm auftretende Zellansammlungen stark ausgedehnt werden, umgekehrt im zellfreien Zustande unsichtbar sein. Reichliche Flüssigkeitsansammlung in diesen Räumen kann eine starke Aufschwellung im gesamten Stützgewebe verursachen (sogenanntes Ödem).
Die Verfestigung der Interzellularsubstanz ist in der Regel mit der Bildung fibrillärer oder membraniger Strukturen verbunden, zwischen denen meist noch als „Kittsubstanz“ ein undifferenzierter Teil der verfestigten Interzellularsubstanz angenommen wird.
Die Bildungsweise der Differenzierungsprodukte der Interzellularsubstanz unterliegt noch der Diskussion. Sie entstehen entweder direkt aus den Bindegewebszellen, binnenzellig in der Hautschicht dieser Zellen, von denen sie sich dann ablösen und mit gleichfalls abgelösten Nachbarfibrillen sich zu zwischenzelligen Bündeln vereinigen (hierbei sollen Plastosomen das Material für die Fibrillenbildung darstellen) oder indirekt aus Bindegewebszellen, welche durch ihre Tätigkeit die zur Fibrillenbildung notwendigen Stoffe der Interzellularsubstanz zuführen, in der es dann nachträglich zur Fibrillenbildung kommt.
Ihrem chemischen, physikalischen und färberischen Verhalten nach lassen sich im wesentlichen zwei Arten von differenzierten Substanzen in der Interzellularsubstanz der Stützgewebe bei höheren Wirbeltieren nachweisen, die kollagenen und die elastischen Substanzen.
Die kollagene[73] Substanz besteht aus äußerst feinen (0,6 µ), gleichmäßig glatten, unverzweigten Fäden (Bindegewebsfibrillen), welche durch eine geringe Menge ungeformter Interzellularsubstanz zu verschieden dicken Bündeln, den Bindegewebsbündeln, verbunden werden. Diese Bündel sind weich, biegsam, wenig dehnbar und charakterisiert durch ihre blassen Konturen, ihre Längsstreifung (die von ihrer Zusammensetzung aus parallel angeordneten Fibrillen herrührt), ihren im ungedehnten Zustand welligen[74] Verlauf, sowie durch ihr chemisches Verhalten; sie zerfallen durch Behandlung mit Pikrinsäure in ihre Fibrillen, quellen auf Zusatz verdünnter Säuren, z. B. Essigsäure, bis zu vollkommener Durchsichtigkeit auf, werden durch alkalische Flüssigkeiten zerstört und geben beim Kochen Leim (Glutin). Daher hat dieses Differenzierungsprodukt seinen Namen.
Mit einer Reihe von Färbemethoden gelingt es, die kollagenen Fibrillen charakteristisch von anderen Gewebsbestandteilen zu unterscheiden; so werden sie bei Pikrofuchsinfärbung (s. Nr. 18, S. 42) rot, bei Eosin-Methylblau (s. Nr. 20, S. 116) blau gefärbt. Während diese „spezifischen“ Färbungen von vielen Autoren auf chemische Eigenschaften der Fibrillen bezogen werden, vermögen wir darin nur den Ausdruck einer spezifischen physikalischen Dichte zu erkennen. Es muß jedenfalls davor gewarnt werden, alles was sich mit diesen „Bindegewebsfärbungen“ im spezifischen Tone färbt, etwa für kollagen zu halten.
In mancher Beziehung weichen die Eigenschaften der Fibrillen im retikulären Gewebe sowie in den sogenannten Gitterfasern der Leber von der verbreiteten Form der kollagenen Fibrillen ab; sie dürften aber im wesentlichen aus den gleichen Substanzen bestehen.
Die Zahl und die Anordnung der kollagenen Fibrillen charakterisieren die mechanische Struktur eines Stützgewebes in besonderem Maße. Bei wechselnder Beanspruchung in verschiedenen Richtungen durchflechten sich die Bindegewebsbündel, ohne besondere Bevorzugung einer einzelnen Verlaufsrichtung. Einseitiger Zug (Sehnengewebe) zwingt die Fibrillen zu unter sich paralleler Anordnung in der Richtung des Zuges.
Die leimgebenden Fibrillen des Knorpel- und Knochengewebes — in beiden sind sie besonders reichlich entwickelt — werden optisch schwerer nachweisbar, weil sie hier durch eine besondere Umwandlung der ungeformten Interzellularsubstanz (beim Knorpel die sogenannten Chondroitinschwefelsäure, beim Knochen Kalksalze) beeinflußt werden.
Die elastische Substanz ordnet sich zu Fasern oder sogenannten gefensterten Membranen; sie zeichnet sich durch die scharfen dunklen Umrisse, durch ihr starkes Lichtbrechungsvermögen, sowie — im Gegensatz zu den kollagenen Substanzen — durch ihre bedeutende Widerstandsfähigkeit gegen Säuren und Alkalien aus. Die elastischen Fasern sind von sehr verschiedener Dicke (von unmeßbar feinen bis zu 10 µ) und kommen meist in Form feinerer oder gröberer Netze vor, die wieder bald eng-, bald weitmaschig sind. Aus dickeren, elastischen Fasern gewebte, engmaschige Netze bilden den Übergang zu elastischen Membranen (Fig. 44), welche entweder homogen oder feinstreifig, von verschieden großen Löchern durchbrochen sind (daher der Name „gefensterte Membranen“).
Über die spezifischen Färbungen der elastischen Substanzen (s. Nr. 6, S. 35) ist das gleiche zu sagen, was oben für die kollagenen Fibrillen ausgeführt wurde.
Die elastische Substanz wird auch als Elastin bezeichnet; es gibt Fälle — vorzugsweise pathologische, z. B. in der verwitterten Gesichtshaut älterer Personen — in denen sich die elastischen Fasern mit den spezifischen sauren Farbstoffen (S. 35) nur schwach, dagegen mit basischen, kernfärbenden Farben stark färben; die Substanz solcher Fasern nennt man Elazin. Andererseits können degenerierende Fasern leimgebender Natur sich mit den genannten sauren Farben stark färben; dieses veränderte Bindegewebe hat man Kollastin genannt.
Die elastischen Fasern sollen binnenzellig (in Form feinster Körnchen?) entstehen, die alsbald zu dünnen, später durch Apposition dicker werdenden Fasern verschmelzen. Nach anderen Autoren entstehen sie nicht direkt in Zellen, sondern durch Umbildung von Bindegewebsfibrillen.
Die elastischen Fasern können in fast allen Arten von Stützgewebe spärlich oder in größerer Zahl auftreten; überwiegen sie gegenüber der kollagenen Substanz an Masse, so beeinflussen sie die mechanischen Eigenschaften des Stützgewebes wie sein Aussehen in bedeutender Weise. Im allgemeinen zeigt die mehr gelbliche Farbe eines Stützgewebes den Gehalt an elastischer Substanz an („gelbes Bindegewebe, gelber Knorpel“).
Fig. 44.
Netzwerk (n) dickerer elastischer Fasern, nach links in eine gefensterte Membran (m) übergehend. Aus dem Endokard des Menschen. 560mal vergr. Technik Nr. 19, S. 116.
Im Gegensatz zu extrem aus kollagenen Differenzierungsprodukten zusammengewirkten Geweben, die nur wenig dehnbar sind, vermögen elastische Gewebe erhebliche Dehnungen nach Aufhören des Dehnungszuges fast völlig wieder auszugleichen. Wirkt der Dehnungszug einseitig, so kommt es zu parallelfaseriger Anordnung des Fasernetzes (elastisches Nackenband); bei zentrifugal flächenhaft wirkender Dehnung (in der Wandung der großen Arterien, s. dort) kommt es zur Membranbildung aus elastischer Substanz.
Mit dem Alter nimmt die Fähigkeit, Dehnungen wieder auszugleichen, allmählich ab, wodurch das Schlaffwerden z. B. des Stützgewebes in der Haut zu erklären ist.
Die Ernährung der Stützgewebe ist durch Diffusionsströme in der Interzellularsubstanz ermöglicht. Die Blutgefäße, die ja als Abkömmlinge des Stützgewebes zu betrachten sind, bringen die Nahrungssubstanzen in allen Teilen des Körpers in die feinsten Verzweigungen des Gefäßsystems, die sogenannten Kapillaren, durch deren dünne Wandung die Nahrungsstoffe in das Stützgewebe übertreten. Hier dienen sie teilweise als Substrat für den Stoffwechsel der Zellen und der Interzellularsubstanz der Stützgewebe selbst, teils gelangen die Nahrungsstoffe auf diesem Wege an die Epithelien und deren Abkömmlinge, die Drüsen. Ebenso werden die Stoffwechselprodukte der Epithelzellen durch das Stützgewebe hindurch den Gefäßbahnen zugeführt. Dadurch werden alle Teile des Stützgewebes, die mit Epithelien in naher Beziehung stehen, zu wichtigen Überträgern des Stoffwechsels dieser Gewebe. Damit steht wieder im Zusammenhang, daß die Kapillaren des Gefäßsystems um so dichter gelagert sind, je größere Stoffwechselzentren in den Stützgeweben liegen (s. bei Gefäßsystem).
Die Formen des Stützgewebes.
1. Das Bindegewebe.
Die Grundsubstanz des Bindegewebes ist mehr oder weniger weich, die Zellen sind spärlich. Man unterscheidet mehrere Arten: a) das gallertartige Bindegewebe, b) das retikuläre und c) das fibrilläre Bindegewebe.
a) Das gallertartige Bindegewebe, Fig. 45, besteht aus einer großen Menge ungeformter, „schleimhaltiger“, feine Bindegewebsbüschel einschließender Grundsubstanz, die in den Maschen des Plasmodiums liegt, und findet sich bei höheren Tieren nur im Nabelstrange der Embryonen, ist dagegen bei vielen niederen Tieren sehr verbreitet[75].
b) Das retikuläre Bindegewebe bildet ein Schwammwerk, dessen Gerüst im wesentlichen aus dem Plasmodium der „Retikulumzellen“ besteht; diese haben eine ganz ähnliche Anordnung wie das Plasmodium im Gallertgewebe. Der Unterschied des letzteren gegen das retikuläre Gewebe besteht im Verhalten der Interzellularsubstanz; in den Lücken des Plasmodiums finden wir nur eine bewegliche Flüssigkeit (Lymphe), in der freie Zellen liegen.
Wir können diese Lymphe als „flüssige Interzellularsubstanz“ auffassen.
Ob an der Oberfläche des Plasmodiums noch festere Interzellularsubstanz ausgebildet ist, darin gehen die Auffassungen auseinander; die das plasmodiale Gerüst stützenden Fasern (Retikulinfasern), die den kollagenen Fibrillen nahe stehen, werden teils als intraplasmatische Bildungen, teils als solche der Interzellularsubstanz (also als extraplasmatische) aufgefaßt (s. Fig. 46).
In besonderer Entfaltung findet sich das Gewebe in den Lymphknoten vor; man bezeichnete diese früher oft als Lymphdrüsen, das retikuläre Gewebe deshalb auch als adenoides[76] Gewebe. Diese Gewebsform ist aber nicht auf die Lymphknoten beschränkt, sondern in ähnlicher Ausbildung in vielen Schleimhäuten, besonders im Darmkanal zu finden.
In Lymphknoten (Milz und Knochenmark) spielen die Zellen des retikulären Gewebes eine besonders wichtige Rolle durch die Fähigkeit Fremdstoffe zu speichern (s. S. 93). Bei starker Zufuhr von Fremdstoffen vermögen sich Zellen aus dem plasmodialen Gefüge loszulösen; diese geraten dann in die Hohlräume und von da in die Lymph- und Blutbahn, wo sie als „Bluthistiozyten“ angetroffen werden (s. a. S. 93).
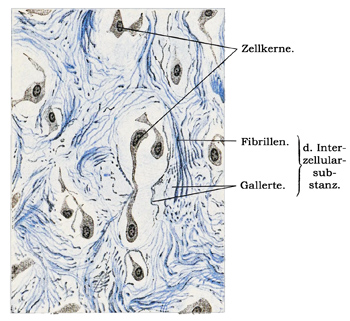
Fig. 45.
Gallertiges Bindegewebe (Nabelstrang zur Zeit der Geburt, Mensch). 500mal verg. Technik Nr. 20, S. 116.
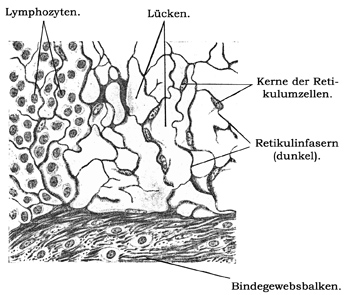
Fig. 46.
Retikuläres Bindegewebe. Aus einem Schnitt durch einen Lymphknoten vom Menschen; links freie Zellen (Lymphozyten) in den Hohlräumen, rechts dieselben weggelassen. 500mal vergr. Technik Nr. 21, S. 117.
c) Das fibrilläre Bindegewebe tritt in sehr verschiedener Gestalt und Zusammensetzung auf.
Je nach der Differenzierungsweise der Interzellularsubstanz gewinnt es ein ganz verschiedenes Aussehen. Wir unterscheiden:
α) das lockere (oder formlose) Bindegewebe (Fig. 47), das überall dort gefunden wird, wo eine ausgesprochene mechanische Beanspruchung fehlt, dagegen die Stoffwechselfunktion (s. S. 98) stark entwickelt ist. Hierdurch erscheint es morphologisch als Verbindungs- und Ausfüllungsmasse zwischen benachbarten Geweben und Organen.
An Zellen finden wir in ihm die meisten Arten der oben besprochenen vor: Fibroblasten, Fettzellen, ruhende Wanderzellen, Mastzellen, verschiedene Formen von weißen Blutzellen, an manchen Stellen Pigmentzellen.
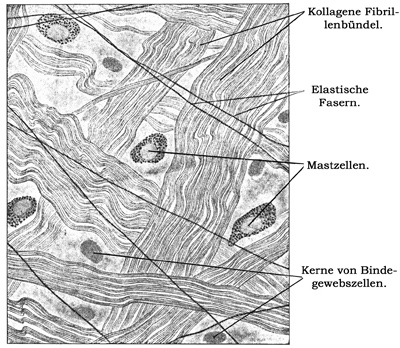
Fig. 47.
Lockeres Bindegewebe. Ausgespanntes Häutchen vom Zwischenmuskelgewebe (Kalb). Färbung der kollagenen, elastischen Fasern und der Mastzellen. 500mal vergr. Technik Nr. 22 S. 117.
Die Interzellularsubstanz ist durch lockere Fügung und mannigfachste Richtung ihrer kollagenen Bündel ausgezeichnet und überall von meist feineren elastischen Fasernetzen durchzogen.
Da, wo lockeres Bindegewebe an Epithel stößt, kommt es nicht selten zur Bildung gleichartig aussehender Häute, die als Grundmembranen (Basement membrane), als Membranae propriae und als Glashäute beschrieben werden. Sie sind zum Teil Modifikationen des Bindegewebes, und bestehen dann aus einem Filz feinster Fasern, zum Teil ein Produkt des Epithels (s. Entwicklung der Glashaut des Haarbalges).
In dünner Lage flächenhaft ausgebreitet findet sich das lockere Bindegewebe in den Mesenterien der Bauchhöhle, gegen die es durch Plattenepithel (Endothel) abgeschlossen wird. Durch Lückenbildung wird das Bindegewebe auf ein Netzwerk reduziert (Omentum, s. Fig. 48 und 22, S. 77).
β) Die geformten Bindegewebe treten überall da auf, wo gesteigerte mechanische Beanspruchungen die Stützsubstanz treffen. Je nach der Art dieser Reize kommt es zu verschiedenen, charakteristischen Bildungsformen. Die interzellularen Differenzierungen überwiegen an Masse stark die Zellen, die Saftströmung dürfte in gleichem Maße erschwert sein; die Zahl der in diesen Geweben anzutreffenden Wanderzellen ist entsprechend bedeutend geringer als im lockeren oder gar im retikulären Bindegewebe.
Schon die Umhüllung größerer Bündel anderer, faseriger Gewebe (Nerven, Muskeln) erfordert stärkere Lagen parallelfaseriger Bindegewebe (Perineurium, Perimysium). Stärkere flächenhafte Dehnungsreize, wie sie von den bei der Zusammenziehung sich verdickenden Muskeln auf die oberflächlichen Bedeckungshäute (Faszien) ausgeübt werden, bewirken oft eine Durchflechtung starker sich kreuzender, kollagener Bündel.
An manchen Stellen der Haut (beim Menschen besonders an Handfläche und Fußsohle) handelt es sich darum, eine gegen Druck widerstandsfähige Bindegewebslage zu schaffen, wobei eine stärkere Ausbildung der kollagenen Fibrillenbündel (bis zur Stärke von 10 µ) und eine Durchflechtung derselben in den verschiedenen Richtungen des Raumes erzeugt wird (Fig. 49). Das kollagene Formelement überwiegt in diesen Geweben das elastische bedeutend.
Wirkt ein Zug auf das Bindegewebe vorwiegend in einer Richtung, so kommen parallelfaserige Bindegewebe zustande, wie sie bei vielen Gelenkbändern vorliegen, in denen dann die Fibroblasten bei reichlicher Fibrillenbildung zu länglichen Zellformen mit spindeligen Zellkernen umgeformt erscheinen. Die enorme Ausbildung kollagener Fibrillenbündel bedingt die starke Widerstandsfähigkeit der Bänder gegen Zug und Zerreißung.
Fig. 48.
Geformtes Bindegewebe. Stückchen des Omentum majus eines Menschen. 60mal vergr. Technik Nr. 23, S. 118.
Die extreme Einseitigkeit in der Ausbildung parallel angeordneter, kollagener Fibrillenbündel, gleichzeitig gänzliche Einseitigkeit starker Zugbeanspruchung charakterisiert das Sehnengewebe.
Die Regelmäßigkeit des Sehnenaufbaues wird durch die Zusammenfassung der Fibrillenbündel zu Primitivbündeln bewirkt; zwischen diesen liegen spärliche Mengen lockeren Bindegewebes, das die zur Ernährung notwendigen Blutgefäße führt. Elastische Fasern, die hier sehr fein sind, kommen nur spärlich vor.
Die Sehnenzellen sind zu säulenartigen Reihen angeordnet (Fig. 50) und die langgestreckten Zellkörper, die einen spindeligen Kern enthalten, liegen dicht von der fibrillär differenzierten Interzellularsubstanz umschlossen, so daß der Zelleib in der Längsrichtung meist eingefurcht wird. Dadurch bekommen die Sehnenzellen die Form eines zentral gelegenen Stabes, von dem nach drei oder vier Seiten dünne blattartige Anhänge abgehen (sogenannte Flügelzellen). In der Fortsetzung dieser peripheren Zellabschnitte ist die Interzellularsubstanz von Spalten durchsetzt, so daß die Orte, an denen die Zellen liegen, auf dem Sehnenquerschnitt durch solche Spalten miteinander in Verbindung stehen (Fig. 51). Ob die Zellen selbst ein zusammenhängendes Plasmodium bilden, ist nicht sicher.
Fig. 49.
Verfilztes Bindegewebe. Schnitt durch die Lederhaut der Handfläche. 500mal vergr. Technik Nr. 24, S. 118.
Fig. 50.
Sehnenbündel mit Sehnenzellen des Menschen. 560mal vergrößert. Technik Nr. 25, S. 118.
Geformtes Bindegewebe kann aber auch bei extremer Ausbildung elastischer Substanz vorkommen. Hierdurch wird bei einseitigem Zuge die Möglichkeit einer Dehnung zugelassen, der dann beim Nachlassen des Zuges die Wiederherstellung der ursprünglichen Länge folgt. Solche Gewebe bezeichnen wir als elastische Bänder (Nackenband, Ligg. flava).
Die elastische Substanz bildet in ihnen parallel gerichtete, aber vielfach untereinander zusammenhängende dicke elastische Fasern (Fig. 52), an denen man eine etwas dichtere Oberflächenschicht darstellen kann. Diese Fasern liegen in der spärlichen Interzellularsubstanz, in der auch kollagene Fibrillen in geringem Grade ausgebildet sind (Fig. 53). Die Zellen, umschlossen von der Interzellularsubstanz, zeigen den gewöhnlichen Typus der Fibroblasten; Wanderzellen werden nur spärlich angetroffen.
Als besonders spezialisierte Abarten des lockeren Bindegewebes betrachten wir endlich das Pigmentgewebe und das Fettgewebe.
Das Pigmentgewebe ist ein lockeres Bindegewebe, bei dem ein Teil der Fibroblasten Pigment enthält. Dieses erfüllt das Zytoplasma in unzähligen feinen rundlichen oder stabförmigen Körnchen, die entweder eine mehr gelbliche oder dunkelbraune Farbe besitzen.
Fig. 51.
Querschnitt durch ein Sehnenbündel (Rattenschwanz). [Nach einem Präparat von M. Heidenhain.] 500mal vergr. Technik Nr. 26, S. 118.
Fig. 52.
Sehr dicke elastische Fasern (f) aus dem Nackenband des Rindes, b Bindegewebsbündel. 560mal vergr. Technik Nr. 27, S. 118.
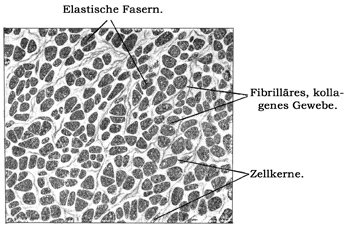
Fig. 53.
Querschnitt durch das Nackenband des Rindes. Elastische Fasern dunkel. 500mal vergr. Technik Nr. 28, S. 118.
Solche Pigmentzellen kommen beim Menschen nur in einzelnen Stellen der Haut und im Auge vor; bei vielen, besonders niederen Tieren sind sie dagegen sehr verbreitet und spielen hier durch ihre besondere Ausbildung vielfach eine große Rolle als Schutz gegen Wärme und Belichtung, zur Erzeugung auffallender Farben usw. Hier wird in besonders ausgeprägten Fällen die allen Zellen zukommende Formveränderlichkeit zu einer wichtigen Eigenschaft: durch Aussenden von Fortsätzen können die Pigmentkörnchen in eine dünnere Lage ausgebreitet werden, durch Zusammenballung der Zelle wird dagegen eine dichte Körnchenlagerung ganz andere Lichteinwirkungen zulassen.
Die Entstehung der Pigmentkörnchen kann offenbar mit den verschiedensten Prozessen in Zusammenhang gebracht werden; in vielen Fällen handelt es sich um einen Farbstoff, der aus dem Hämoglobin der Blutkörperchen durch Zersetzung entsteht und von den Bindegewebszellen gespeichert wird (hämatogenes Pigment). Andere Pigmente (Melanine, Luteïne) mögen autochthon durch fermentative Tätigkeit der Zellen selbst entstehen. Ontogenetisch wird die Pigmentbildung von manchen Forschern mit den Plastosomen in Verbindung gebracht.
Nicht jede Pigmentzelle ist eine Bindegewebszelle, es gibt auch pigmentierte Epithelzellen, z. B. im Auge.
Das Fettgewebe ist ebenfalls nur eine Abart des lockeren Bindegewebes, da die Ausbildung von vereinzelten Fettzellen überall in dieser Gewebsform vorkommt. Auch wissen wir, daß bei starker Fettbildung im Körper auch an solchen Stellen des Bindegewebes ein Überwiegen der Fettzellen gefunden wird, wo wir sie normalerweise nur vereinzelt vorfinden.
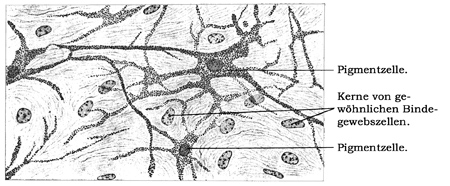
Fig. 54.
Pigmentgewebe im Corpus ciliare des Auges (Kaninchen). Die Pigmentzellen haben den plasmodialen Zusammenhang bewahrt. 500mal vergr. Technik Nr. 29, S. 118.
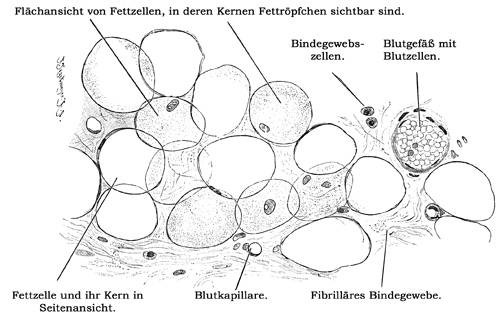
Fig. 55.
Stückchen Fettgewebe aus einem Schnitt der menschlichen Kopfhaut, etwa 240mal vergr. Technik Nr. 31, S. 119.
Die Fettsubstanzen sind Glyzerinester hochwertiger Fettsäuren, zum Teil auch fettsaure Salze. Histologisch ist Fett gut zu charakterisieren: 1. frisch durch seine eigenartige Lichtbrechung, 2. nach Osmiumbehandlung durch die Schwärzung (welche nicht ganz spezifisch ist), 3. nach Formolfixation unter Vermeidung fettlösender Agentien (Alkohol, Äther, Chloroform, Xylol) durch Färbung mit Sudan III, Scharlach R. u. a. sogenannten, indifferenten Farbstoffen. (Genaueres s. in Lehrbüchern der Mikrotechnik.)
An Fettzellen bildet das Zytoplasma nur einen schmalen, an der Peripherie gelegenen Saum, während der größte Teil der Zelle von einem großen Fettropfen eingenommen wird. Peripher befindet sich auch der stark abgeplattete Kern, der in gut ausgebildeten, nicht aber in atrophischen Fettzellen regelmäßig ein oder mehrere scharf umschriebene Fettröpfchen enthält (Fig. 55). Häufig ist der Zytoplasmasaum so dünn, daß er nicht mehr zu sehen ist. Anhäufungen von Fettzellen geben Veranlassung zur Bildung einer von zahlreichen Blutgefäßen, Lymphgefäßen und Nerven durchzogenen Formation, des Fettgewebes, das in physiologischer Beziehung (Stoffwechsel) eine sehr wichtige Rolle spielt.
Das Fettgewebe ist nach dieser Darstellung eine Modifikation des ausgebildeten Bindegewebes, besitzt aber eigene, embryonale Bildungsstätten und entwickelt sich durch Bildung anfangs zahlreicher, kleiner Tröpfchen aus großen, zytoplasmareichen Bindegewebszellen (Steatoblasten)[77]. An denjenigen Körperstellen, an denen sich regelmäßig Fettgewebe findet, unterscheiden sich die jungen, mehr kugligen, kleine Fettröpfchen enthaltenden Fettzellen von den anderen, platten Bindegewebszellen. Die Zellen des Fettgewebes würden sich also von den Fett enthaltenden Bindegewebszellen dadurch unterscheiden, daß sie differenzierte Gebilde darstellen, die, auch wenn sie ihr Fett verloren hätten, keine Bindegewebszellen mehr werden könnten, ebensowenig wie eine vom Mesoderm stammende glatte Muskelzelle je zu einer Bindegewebszelle wird.
Bei hohen Graden von Abmagerung findet man in einzelnen Fettzellen das Fett bis auf kleine Tröpfchen verschwunden; ein blasses, mit schleimiger Flüssigkeit vermengtes Zytoplasma ist an dessen Stelle getreten, die Zelle ist nicht mehr kugelrund, sondern platt geworden. Man nennt solche Zellen seröse Fettzellen (Fig. 56). In vielen Fettzellen treten nach dem Tode oft kuglige Haufen nadelförmiger Kristalle, sogenannte Margarinkristalle auf.
Fig. 56.
Seröse Fettzellen aus der Achselhöhle eines hochgradig abgemagerten Individuums. 240mal vergr. k Kern, f Fettröpfchen, c Blutkapillaren, b Bindegewebsbündel. Technik Nr. 30, S. 118.
2. Das Knorpelgewebe.
An Stellen, wo sich Knorpelsubstanz ausbildet, wird das Gefüge des plasmodialen Schwammes zunächst dichter, indem die Lücken zwischen den Zytoplasmasträngen zunächst kleiner werden, dann vollständig schwinden (Fig. 57). An Stelle der Lücken bilden sich nun zuerst dünne Scheidewände einer festeren Substanz aus, wodurch zytoplasmatische Bezirke abgegrenzt werden, die je einen Zellkern enthalten (Knorpelzellen). Die Scheidewände sind die ersten Anfänge dessen, was wir Interzellularsubstanz des Knorpels nennen.
Von manchen Autoren wird auch die Grundsubstanz des Knorpels als Exoplasma aufgefaßt, das Zytoplasma der Knorpelzellen demnach als Endoplasma.
Auf dieser Bildungsstufe (sogenanntem Vorknorpelgewebe) besitzt der Knorpel eine gewisse Ähnlichkeit mit dem sogenannten vesikulösen Gewebe, in welchem stets blasige Zellen mit festen Wänden gefunden werden. In ihm bilden die flüssigkeitsreichen Zellen, die nur von einer dünnen Schicht von Interzellularsubstanz umgeben sind, druckelastische Blasen, deren Turgordruck die mechanische Widerstandsfähigkeit des Gewebes bedingt. Solche Zellen, die übrigens auch Übergänge zu echten Knorpelzellen zeigen, finden sich bei vielen Wirbellosen, wo sie früher als Knorpelzellen bezeichnet worden sind; sie kommen aber auch bei Wirbeltieren (Achillessehne des Frosches) und selbst beim Menschen (an der Innenfläche der Ansatzsehne des M. quadriceps femoris und an den Sesambeinen der Sehne des Peroneus longus) vor.