II. Abschnitt. Mikroskopische Anatomie und spezielle Technik. (continued 7)
Reading edition
Dieser Reichtum an elastischen Fasern ermöglicht, daß die Alveole bei der Inspiration sich um das Dreifache ihres Durchmessers erweitert und bei der Exspiration zu ihrem ursprünglichen Durchmesser (0,1 bis 0,3 mm) wieder zurückkehrt. An der Grenze gegen das Lungenepithel löst sich das Bindegewebe in ein Netz feiner Gitterfasern (S. 96) auf. Auch die bis in die Alveolengänge nachgewiesene Muskulatur dürfte für die exspiratorischen Bewegungen wichtig sein.
Das zwischen den Lungenläppchen befindliche interlobuläre Bindegewebe ist der Träger der größeren Blut- und Lymphgefäße und enthält außer feinen, elastischen Fasern und einzelnen Bindegewebszellen beim Erwachsenen schwarze Pigmentkörnchen und kleinste Kohlenteilchen, die durch die Einatmung dorthin gelangt sind. Bei Kindern ist das interlobuläre Bindegewebe reichlicher entwickelt, die Abgrenzung in Läppchen also deutlicher.
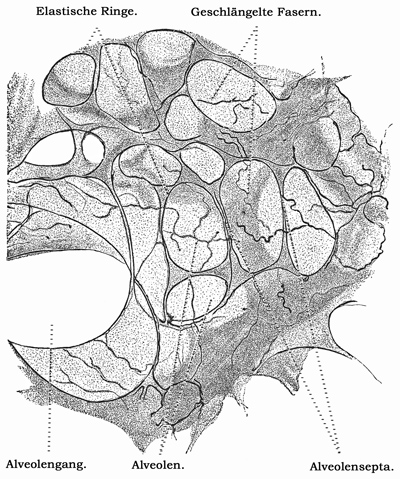
Fig. 283.
Durchschnitt der Lunge eines Kaninchens. 220mal vergrößert. Färbung elastischer Fasern. Technik Nr. 147b, S. 375.
Die Oberfläche der Lungen wird von der Pleura visceralis überzogen; diese besteht aus Bindegewebe, zahlreichen, feinen, elastischen Fasern, Bündeln glatter Muskelfasern und ist an der freien Oberfläche von einer einfachen Schicht platter, polygonaler Epithelzellen überkleidet. Die gleichgebaute Pleura parietalis ist nur ärmer an elastischen Fasern und Muskulatur.
Die Blutgefäße der Lungen lassen zwei Systeme unterscheiden: 1. das respiratorischen Zwecken dienende System der Arteriae und Venae pulmonales; 2. das System der Arteriae und Venae bronchiales. 1. Die Äste der Art. pulmon. dringen in den Lungenhilus ein und laufen an der Seite der Bronchialäste in die Läppchen zu den Bronchiolen, Alveolengängen und Alveolensäckchen, wo sie sich in ein sehr engmaschiges Kapillarnetz auflösen, das dicht unter dem respiratorischen Epithel der Bronchioli respiratorii, der Alveolengänge und der Alveolen gelegen ist und mit einem unter der Pleura pulmonalis gelegenen, weitmaschigen Kapillarnetz zusammenhängt. Die Lungenvenen entstehen am Grunde je eines Alveolus (Fig. 284), nehmen an der Lungenoberfläche Venen aus den Kapillaren der Pleura auf und sammeln sich zu Stämmchen, die an der Peripherie der Läppchen verlaufen und erst später an die Seite der (größeren) Bronchialäste herantreten. 2. Die Arteriae bronchiales versorgen die Bronchialverästlungen bis zu den Bronchioli respiratorii und speisen ein tiefes, für Drüsen und Muskeln und ein oberflächliches für die Tunica propria bestimmtes Kapillarnetz; auch die Wandungen der Lungenarterien und -venen, die Glandulae lymphaticae bronchiales, sowie die Pleura pulmonalis erhalten Äste von den Bronchialarterien. Die Venae bronchiales ergießen ihr Blut zum Teil in Lungenvenen (Fig. 279 ×), zum Teil in das Gebiet der Vena azygos. Zwischen Lungen- und Bronchialarterien bestehen stärkere und feinere Anastomosen.
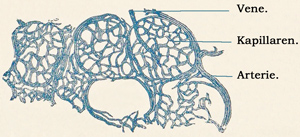
Fig. 284.
Aus einem Schnitte durch die von der Art. pulmonalis aus injizierte Lunge eines Kindes. 80mal vergrößert. Von den fünf gezeichneten Alveolen sind die drei oberen vollkommen injiziert. Technik Nr. 148, S. 375.
Von Lymphgefäßen kennen wir ein oberflächliches und ein tiefes Netz; das gut entwickelte, unter der Pleura pulmonalis gelegene, oberflächliche Netz hängt mit regellos unter der Pleura verteilten, erbsengroßen Lymphknoten zusammen und mündet mit mehreren klappenführenden Stämmchen in die bronchialen Lymphknoten. Das in dem interlobulären Bindegewebe befindliche, weitmaschige tiefe Netz sammelt die Lymphgefäße der Bronchialschleimhaut und der Blutgefäßwände; aus diesen gehen klappenführende Stämmchen hervor, welche mit den Bronchialästen verlaufend am Hilus austreten, und dort in die Bronchiallymphknoten münden.
Ähnlich wie in der Trachea kommen auch in den Bronchen an vielen Stellen Gruppen sympathischer Ganglienzellen vor; im Verein mit von außen zutretenden sympathischen und parasympathischen (Vagus) Fasern bilden sie den Plexus pulmonalis. Dieser reguliert die Blutgefäße und vor allem die glatte Muskulatur der Bronchiolen und Alveolargänge, die sich bei Erregung der parasympathischen Fasern zusammenziehen, bei Erregung der sympathischen dagegen erschlaffen.
Zahlreiche markhaltige sensible Nerven, die in der Pleura parietalis mit Lamellen- und vielen Golgi-Mazzonischen Körperchen in Verbindung stehen, aber auch frei enden, dürften in der Bahn des Vagus zum Gehirn laufen.
Technik.
Nr. 144. Kehlkopf, Luftröhre. Man präpariere die Luftröhre (Mensch, Katze, Kaninchen) über dem Manubrium sterni frei, schneide sie und den Ösophagus quer durch und präpariere beide nach aufwärts los (s. Nr. 127, S. 360). Die Zunge kann gleichfalls mit herausgenommen werden. Die Schilddrüse läßt man am Kehlkopf hängen. Behandlung nach Nr. 110, S. 289. Besonders instruktiv sind Schnitte quer durch die Stimmbänder, auf denen Schleimhaut, Drüsen, Muskeln, Gefäße, Nerven und Knorpel Stoff zu den verschiedensten Studien geben.
Nr. 145. Bronchialast. Aus dem gleichen Tier nehme man die Lungen und schneide ein ca. 1 ccm großes Stück heraus, das ein längsverlaufendes Stück Bronchus enthält, entferne mit einer Schere den größten Teil des anhängenden Lungengewebes, Weiterbehandlung nach Nr. 110, S. 289. Die Methode ist auch zur Darstellung von Alveolen und Alveolengängen zu verwenden.
Nr. 146. Lungenepithel. Zur Darstellung desselben können nur ganz frisch getötete Tiere verwendet werden; zu empfehlen sind junge (nicht neugeborene) Katzen, die durch Kopfabschneiden getötet werden. Trachea und Lunge werden sorgfältig herausgenommen und mit einer vorher bereiteten verdünnten Lösung von Argent. nitr. (50 ccm der 1%igen Lösung zu 200 ccm destilliertem Wasser) vermittels einer Glasspritze prall gefüllt. Die Trachea wird dann fest zugebunden und das Ganze auf 1-12 Stunden in den Rest der nicht zum Injizieren verwendeten Silberlösung eingelegt und ins Dunkle gestellt. Alsdann werden die Lungen mit destilliertem Wasser kurz abgespült und in 150 ccm allmählich verstärkten Alkohol übertragen, woselbst sie beliebig lange im Dunkeln aufbewahrt werden können. Die Reduktion kann eine Stunde oder beliebig später nach der Silberinjektion vorgenommen werden. Zu dem Zwecke werden die Lungen in Alkohol dem Sonnenlichte ausgesetzt, woselbst sie sich in wenigen Minuten tief bräunen. Dann bette man in Paraffin (S. 22) ein und schneide 30-40 µ dicke Schnitte, die man aufgeklebt (S. 29) oder unaufgeklebt entparaffiniert, aus Xylol durch Alkohol in Wasser bringt. Die Schnitte werden 10-60 Minuten lang in 5-10 ccm destilliertes Wasser, dem man ein linsengroßes Stückchen Kochsalz zugefügt hat, gelegt und ungefärbt oder nach Hämatoxylinfärbung (S. 32) in Xylolbalsam (S. 45) konserviert. Es ist nicht gerade leicht, sich an solchen Durchschnitten zu orientieren; man beginne die Untersuchungen mit schwachen Vergrößerungen. Die kleinen Alveolen sind leicht kenntlich; die etwas größeren Lücken entsprechen Alveolengängen. Die Epithelzeichnung ist im ganzen zierlicher bei mittelstarken (80 : 1) Vergrößerungen und durchaus nicht an allen Stellen gleich gut ausgeprägt. Die kubischen Epithelzellen sind meist etwas dunkler braun gefärbt. Man suche sich eine gute Stelle aus und betrachte sie mit starker Vergrößerung (240 : 1), wobei man nicht zu vergessen hat, durch verschiedene Einstellung (Heben und Senken des Tubus) sich über das Relief des Präparates zu orientieren. Man sieht nämlich bei starker Vergrößerung entweder nur den Grund oder nur den Rand einer Alveole deutlich. Fig. 282B ist bei wechselnder Einstellung gezeichnet. Die Poren sind nicht an jeder Alveole nachzuweisen.
Nr. 147. Elastische Fasern der Lunge a) frisch, erhält man, wenn man mit einer Schere von einer frisch angefertigten Schnittfläche einer Lunge (die Lunge kann schon alt sein) ein ca. 1 qcm großes flaches Stückchen abschneidet, mit Nadeln auf dem trockenen Objektträger ausbreitet, mit dem Deckglase bedeckt und ein paar Tropfen zur Hälfte mit Wasser verdünnter Kalilauge zufließen läßt (S. 47). Die verdünnte Lauge zerstört die übrigen Teile, nur die elastischen Fasern bleiben erhalten, deren Dicke und Anordnung bei stärkerer Vergrößerung (240 : 1) leicht zu untersuchen ist.
b) für Dauerpräparate fixiere man 1-2 ccm große Stückchen Lunge in Alkohol absol. (S. 14) 48 Stunden, färbe dicke Schnitte mit Resorzin-Fuchsin (S. 35) und konserviere in Xylolbalsam (Fig. 283).
Nr. 148. Blutgefäße der Lungen. Man injiziere die Lunge von der Arteria pulmonalis aus mit Berliner Blau, fixiere sie dann in Müllerscher Flüssigkeit und härte sie in Alkohol. Man mache dicke, vorzugsweise parallel den Oberflächen der Lungen geführte Schnitte (Fig. 284).
VII. Harnorgane.
Die Nieren.
Der typische Aufbau der Niere wird am besten an sogenannten Isolationspräparaten (s. Technik Nr. 149, S. 389) klar, die einzelne Kanälchen oder Teile von solchen zur Anschauung bringen; wir besprechen deshalb zuerst die Zusammensetzung des einzelnen Kanälchens, danach die Einordnung desselben in den Gesamtaufbau der Niere.
An jedem Harnkanälchen (Fig. 285) unterscheiden wir (in der Richtung, in der der Harn fließt, geordnet):
1. Den Glomerulus (Nierenkörperchen, Malpighisches Körperchen).
2. Das Hauptstück, dessen Verlauf und Anordnung eine pars contorta (früher Tubulus contortus I) und eine pars recta (früher oft zur Henleschen Schleife gerechnet) unterscheiden läßt; die pars recta gehört morphologisch und funktionell mit der pars contorta zusammen.
3. Den dünnen Teil der Henleschen Schleife, der in verschiedener Weise übergeht in den
4. dicken Teil der Henleschen Schleife.
5. Das Schaltstück (Tub. contorus II) das in sich noch strukturelle Differenzen erkennen läßt. Dieses führt endlich in das System der Sammelrohre über, die von mehreren Kanälchen gemeinsam benutzt werden und nach ihrer Größe eingeteilt werden in
6. Sammelröhrchen,
7. Sammelrohre und
8. Ductus papillares.
In Schnitten durch die Niere findet man die einzelnen Abschnitte der Harnkanälchen auf ganz gestimmte Bezirke beschränkt. Die gewunden verlaufenden Abschnitte (pars contorta des Hauptstückes und das Schaltstück) sowie die Glomeruli bilden die Rindensubstanz (auch Labyrinth genannt). Im Marke verlaufen, wenn wir die sogenannten Markstrahlen des Rindengebietes dazu rechnen, alle gestreckt verlaufenden Abschnitte der Harnkanälchen (Fig. 286).
Dabei finden wir in den Markstrahlen (Fig. 290) die sehr verschieden lange pars recta der Hauptstücke, die dicken, rindenwärts ziehenden Teile der Henleschen Schleifen und die Anfangsteile des Sammelrohrsystems; in der Außenzone (Fig. 285) des Markes kommen zu den genannten Teilen noch die dünnen, papillenwärts ziehenden Teile der Henleschen Schleifen hinzu, Hauptstückanteile sind nur mehr in den äußeren Teilen der Außenzone anzutreffen; in der Innenzone des Markes endlich treffen wir zumeist nur noch dünne Anteile der Henleschen Schleifen und die papillenwärts immer weiter werdenden Durchschnitte durch das Sammelrohrsystem an.
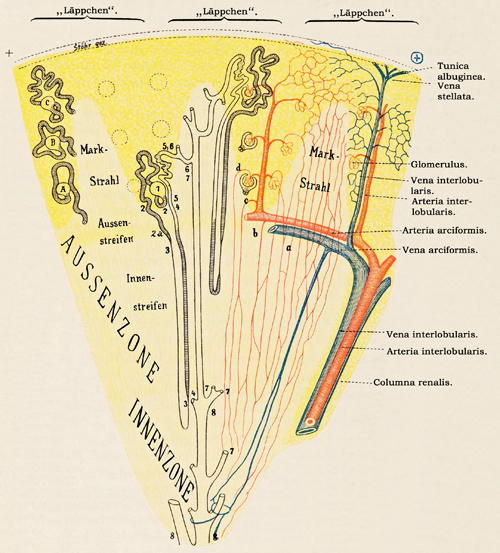
Fig. 285.
Schema des Verlaufes der Harnkanälchen und der Blutgefäße der menschlichen Niere. Die Kanälchen sind im Verhältnis zur Höhe des Nierendurchschnittes viel zu groß gezeichnet.
1 Glomerulus, 2-2 Hauptstück (pars contorta), 2a Hauptstück (pars recta), 3-3 dünner Teil der, 4-4 dicker Teil der Henleschen Schleife, 5-5 Schaltstück, 6-6 Sammelröhrchen, 7-7 Sammelrohr, 8 Ductus papillaris. Jedes Hauptstück bildet eine stets mit dem Scheitel peripheriewärts gestellte Arkade (A), dieselbe wird jedoch durch Windungen erster (B) und zweiter (C) Ordnung undeutlich, a, b, c, d s. Text S. 383.
Im Bau sind besonders die Glomeruli und die Hauptstücke auffallend; ihnen wird deshalb gewöhnlich die Hauptrolle bei der Harnbereitung zugeschrieben.
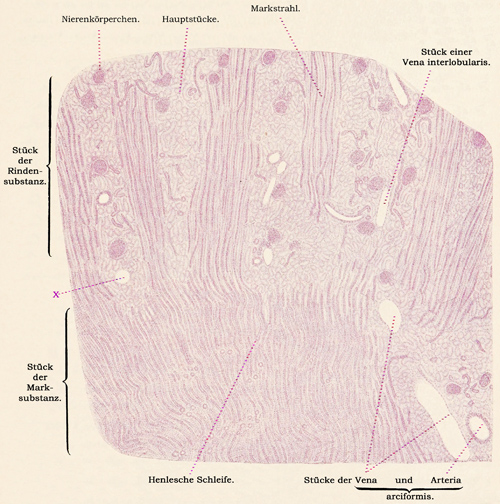
Fig. 286.
Stück eines Schnittes der menschlichen Niere in der Richtung von der Rinde gegen das Mark geführt. 25mal vergrößert. Bei × ist ein Nierenkörperchen herausgefallen. Technik Nr. 150, S. 390.
Die Glomeruli bieten die innigste Vereinigung des die auszuscheidenden Substanzen enthaltenden Blutes mit der Epitheloberfläche dar. Der Glomerulus 0,13-0,22 mm groß, besteht aus einem kugligen Blutgefäßplexus, der in das sackförmig erweiterte, blinde Anfangsstück des Harnkanälchens, die Glomeruluskapsel (Bowman), derart eingestülpt ist, daß er von der Kapsel größtenteils umfaßt wird. Die Einstülpung ist etwa so, wie im großen das Herz in den Herzbeutel eingestülpt ist. Demnach können wir an der Kapsel zwei Blätter unterscheiden, ein inneres (quasi viszerales), dem Glomerulus dicht anliegendes — es besteht bei jungen Tieren aus kubischen, später sich immer mehr abplattenden, plasmodial (S. 152) verbundenen Zellen — und ein äußeres (quasi parietales) Blatt, welches aus platten, polygonalen Zellen aufgebaut wird (Fig. 287).
Es ist bis jetzt noch nicht gelungen, das sonst in allen Abteilungen der Harnkanälchen befindliche Schlußleistennetz (S. 79) hier nachzuweisen.
Die außerordentliche Entfaltung der Blutgefäßoberfläche (s. unten) legt es nahe, in die Glomeruli den Hauptexkretionsort zu verlegen. Nach der Ansicht der Mehrzahl der Forscher liefert jedoch der Glomerulus nur Wasser und einige Salze, während die Ausscheidung der sogenannten festen Harnbestandteile in die Hauptstücke verlegt wird. Die Möglichkeit ist aber nicht von der Hand zu weisen, daß alle Harnbestandteile in verdünnter Lösung aus dem Blute durch die Glomeruluskapsel durchtreten; man müßte dann den Hauptstücken eine andere Aufgabe zuweisen (s. unten).
Das Epithel der Hauptstücke ist die Fortsetzung des parietalen Glomeruluskapselepithels (Fig. 288), unterscheidet sich aber von diesem durch die eigenartige Zusammensetzung seiner Zellen. Deren Form ist kubisch (Fig. 289), ihr Zytoplasma in frischen Präparaten trübe durch den Einschluß vieler körniger und fädiger Gebilde. Die Hauptmerkmale dieser Zellen — beide deutlich nur durch Spezialmethoden darstellbar — sind der luminale Abschluß durch den sogenannten Bürstensaum und die Stäbchenstruktur des Zytoplasmas.
Der Bürstensaum ist ein meist ziemlich breiter das Lumen begrenzender Zytoplasmaabschnitt, der, schwer fixierbar, offenbar auch funktionellen Schwankungen unterliegt. Oft erscheint er feinstreifig und ist dann der ähnlichen Oberflächenbegrenzung in dem sogenannten Synzytium der Plazenta (s. Fig. 322, S. 420) vergleichbar. In den üblichen Präparaten sieht man an seiner Stelle oft nur eine fetzig begrenzte, luminale Oberfläche. Sehr häufig wölben sich hier kuglige Blasen aus den Zellen in das Lumen vor (× auf Fig. 288), die von den einen als Sekret, von den anderen wohl mit mehr Recht als Kunstprodukte betrachtet werden.
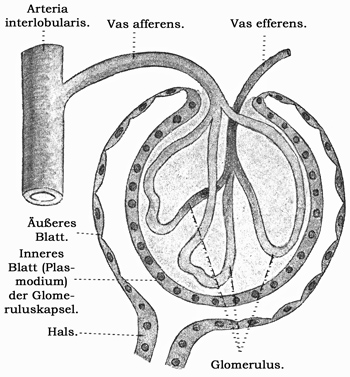
Fig. 287.
Schema eines Nierenkörperchens.
Die Stäbchenstruktur gehört zu den Plastosomen (s. S. 59); sie ist nach manchen Autoren starken funktionellen Schwankungen unterworfen; andere Autoren betrachten aber die aufgefundenen Unterschiede als Folgen einer ungleichmäßigen Technik, da die Stäbchen gegen fixierende Reagentien sehr empfindlich sind. Die Stäbchen (oft als auf Fäden aufgereihte Körnerreihen erscheinend) beginnen etwas unterhalb des Bürstensaumes und reichen nur mit ganz feinen Fäden bis an die Zellbasis, wobei sie den Zellkern leicht bogenförmig umziehen.
Besonders zwischen Zellkern und Bürstensaum liegt stäbchenfreies Zytoplasma (sogenanntes supranukleäres Zytoplasma) vor (Fig. 289), das mannigfache, sehr wechselnde Einschlüsse enthält. Fett, Harnsäure, Pigment usw. kann hier, bei größerer Menge auch in den übrigen Teilen der Zelle, abgelagert werden.
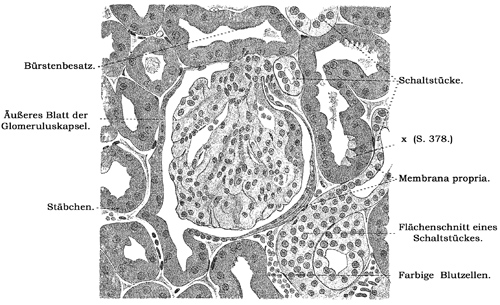
Fig. 288.
Aus einem Schnitte durch eine Niere eines Hingerichteten. 240mal vergrößert. Das den Glomerulus überkleidende Epithel (d. h. das innere Blatt der Kapsel) ist nicht deutlich zu erkennen. Technik Nr. 150, S. 390.
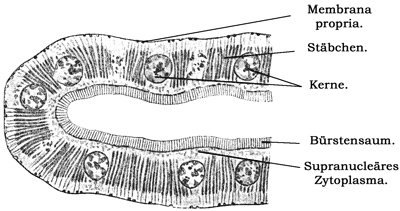
Fig. 289.
Hauptstück aus der Niere einer Ratte. 750mal vergrößert. Technik Nr. 150, S. 390.
Die Ablagerung aller dieser Substanzen darf nicht als Sekretionsvorgang betrachtet werden; vielmehr haben wir hier eine typische Speicherung vor uns, wie besonders eine Analyse der Ausscheidung saurer Farbstoffe gezeigt hat. Die Speicherung (s. Fig. 28, S. 83) vollzieht sich während der Ausscheidung und beschränkt sich auf die Hauptstückepithelien. Dadurch ermöglichen „vitale Färbungen“ der Nieren mit Trypanblau und ähnlichen Farbstoffen eine isolierte Hervorhebung der Hauptstücke (Fig. 290) in Isolationspräparaten und Schnittbildern. Welche physiologische Bedeutung dem Speicherungsvermögen der Hauptstücke zukommt, ist noch nicht klargestellt. Die gespeicherten Substanzen können entweder vom Blute her aus einem Sekretionsstrome stammen, oder aber durch Rückresorption in die Epithelzellen gelangen. Den letzteren Modus müßte man annehmen, wenn alle Harnbestandteile im Glomerulus abgesondert werden (s. oben). Jedenfalls bringt die Bezeichnung „sekretorischer“ Abschnitt eine Ansicht über die Bedeutung des Hauptstückes zum Ausdruck, die noch des Beweises entbehrt.
In der Richtung vom Glomerulus nach dem Übergang in die Henlesche Schleife ändert sich bei allen Hauptstücken die Struktur gleichsinnig; die Stäbchenstruktur ist in den glomerularen Schlingen am dichtesten wird dann immer lockerer, je mehr man sich der Henleschen Schleife nähert, um im letzten Abschnitt des Hauptstückes einer Anordnung der plastosomalen Substanzen Platz zu machen, die den Namen Stäbchenstruktur nicht mehr verdient; hier sind nur noch feine Körnchen im Zytoplasma nachzuweisen.
Sehr schön kommt dieser funktionell offenbar wichtige Gesamtaufbau des Hauptstückes in der Farbstoffspeicherung (Fig. 290) zum Ausdruck; diese beginnt in der ersten Zeit der Ausscheidung am glomerularen Ende und ist, wenn nach längerer Ausscheidungszeit das ganze Hauptstück beladen ist, am gleichen Ende am stärksten ausgebildet. Alle Hauptstücke einer Niere speichern in gleicher Zeit im Verhältnis zu ihrer Länge gleich stark.
Bei gesteigerter Exkretion pflegt das sonst enge Lumen der Hauptstücke bei gleichzeitiger Abflachung des Epithels weit zu werden.
Im Querschnitt mißt das Hauptstück der menschlichen Niere durchschnittlich 40-60 µ, in der Länge etwa 14 mm; doch bestehen hier beträchtliche Längenunterschiede.
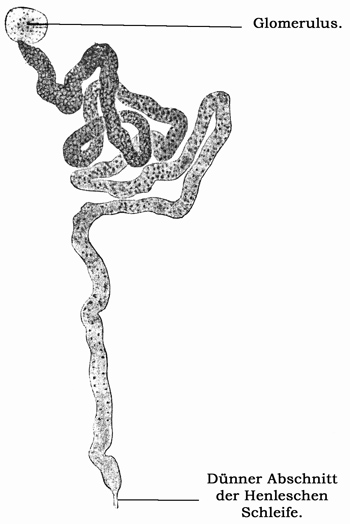
Fig. 290.
Das ganze Hauptstück eines Nierenkanälchens der Maus, isoliert, nachdem das Tier längere Zeit Farbstoff ausgeschieden hatte. (Nach v. Möllendorff 1915.) Technik Nr. 151, S. 390.
Die Epithelien aller anderen Abschnitte des Harnkanälchens sind gegen das Lumen mit einem scharfen Abschluß versehen. Der Übergang des Hauptstückes in den dünnen Teil der Henleschen Schleife ist ziemlich scharf abgesetzt; das Kaliber vermindert sich auf 9-16 µ. Die platten, hellen Epithelzellen sind mit oft gegen das sehr weite Lumen vorspringenden Kernen versehen (Fig. 291, 1). Ihm folgt unter schneller Zunahme des Kalibers der 23-28 µ „dicke Abschnitt“, dessen Lumen relativ enger ist und der zwei in sich wieder verschieden aussehende Anteile besitzt. Der erste ähnelt in der Stäbchenstruktur des Zytoplasmas den Hauptstücken; doch fehlt ihm der Bürstensaum. Die Epithelzellen des zweiten Anteiles, der an das Schaltstück angrenzt, sind bei etwa gleicher Höhe heller (Fig. 285).
Die Übergangsstelle liegt ebenso wie der Übergang von den trüberen zu den helleren Epithelzellen des dicken Abschnitts im Bereich der Außenzone des Markes, und zwar in deren „Außenstreifen“, welcher makroskopisch als ein rötlicher Streifen an der frischen, als ein gelblicher Streifen an der in Salzsäure gelegten Niere sichtbar ist. Als Innenstreifen der Außenzone wäre dann die breite, bis zur Innenzone reichende Strecke zu bezeichnen (vgl. Fig. 285).
Die gesamte Henlesche Schleife kann sehr lang sein und dann weit papillenwärts reichen; dann liegt die Umbiegungsstelle stets im dünnen Abschnitt. Bei den in der menschlichen Niere vorwiegenden kurzen Schleifen ist der dünne Teil sehr kurz, die Umbiegungsstelle liegt dann im dicken Abschnitt.
Die 39-44 µ dicken Schaltstücke sind beim erwachsenen Menschen in ihrem letzten, in die Sammelröhrchen sich fortsetzenden Abschnitt durch unregelmäßige Ausbuchtungen (Fig. 285, 5) und — an Salzsäuremazerationspräparaten — durch ihre dunkle Farbe charakterisiert, welche durch kleine, in den Epithelzellen befindliche Kristalle bedingt wird. Das Schaltstück erreicht regelmäßig wieder den zu ihm gehörigen Glomerulus, in dessen unmittelbarer Nachbarschaft Durchschnitte des Schaltstückes leicht nachzuweisen sind (Fig. 288).
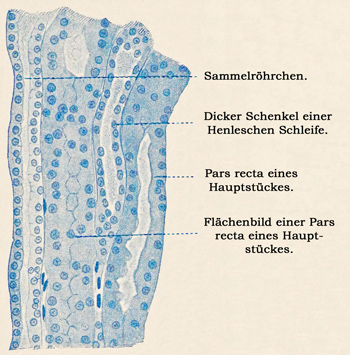
Fig. 291.
Kanälchen eines Markstrahles. Aus einem Längsschnitte durch die Niere eines Hingerichteten. 240mal vergrößert. Technik Nr. 150, S. 390.
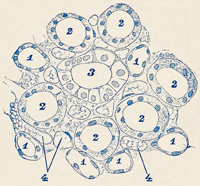
Fig. 292.
Aus einem Querschnitte der Marksubstanz der menschlichen Niere. 240mal vergr. Der Schnitt ist durch die Basis der Papille geführt. 1. dünne, 2. dicke Abschnitte Henlescher Schleifen, 3. Sammelrohre, 4. mit Blutzellen gefüllte Blutgefäße. Technik Nr. 150, S. 390.
Die Epithelzellen der feinsten, 25 µ dicken Sammelröhrchen (man hat sie auch „Verbindungsstücke“ genannt) sind kubisch; die teils hellen, teils dunkleren Epithelzellen der dickeren Sammelrohre und die der 200-300 µ dicken Ductus papillares sind einfache hohe Zylinder, die an der Mündung der Ductus in ein die Oberfläche der Nierenpapillenspitze überziehendes mehrreihiges Zylinderepithel übergehen, das sich seinerseits allmählich in das Übergangsepithel der Nierenkelche (S. 384) fortsetzt.
Die Bedeutung der Henleschen Schleifen, Schaltstücke und Sammelrohre ist im einzelnen ebensowenig klargestellt wie diejenige der Hauptstücke. Physiologische Versuche haben nachgewiesen, daß im gesamten Nierenmarke, vermutlich durch Wasserresorption, das Sekret der oberen Abschnitte eingedickt wird. Welche Anteile der Harnkanälchen an dieser Wassersparung besonders beteiligt sind, steht dahin.
Glomeruluskapsel und Harnkanälchen sind in ihrer ganzen Länge nach außen vom Epithel mit einer strukturlosen Membrana propria überzogen, welche am dünnen Schleifenabschnitt am dicksten ist, gegen die Ductus papillares aber allmählich verschwindet.
Eine ganz besondere Rolle spielt in der Niere der Blutgefäßbindegewebsapparat, was zum Teil in seiner Anordnung zum Ausdruck kommt. Die Harnkanälchen werden von einer geringen Menge lockeren Bindegewebes („interstitielles Bindegewebe“) umhüllt, welches an der Nierenoberfläche zu einer fibrösen, glatte Muskeln und, im Alter sich mehrende, elastische Fasern enthaltenden Membran, der Tunica albuginea, verdichtet ist. Das interstitielle Bindegewebe ist verhältnismäßig arm an elastischen Fasern und bildet ein Blutgefäße und Harnkanälchen einhüllendes zierliches Netz von Gitterfasern.
Blutgefäße der Nieren. Die Arteria renalis teilt sich im Nierenhilus in Äste, welche, nach Abgabe kleiner Zweige für die Capsula fibrosa, die Tunica albuginea und für die Nierenkelche, sich im Umkreise der Papillen als Arteriae interlobares in das Parenchym der Niere (Fig. 285) einsenken und astlos bis zur Grenze zwischen Mark- und Rindensubstanz vordringen. Hier verlaufen sie als Arteriae arciformes in peripherisch konvexem, sehr unregelmäßig gekrümmtem Bogen der Grenze entlang. Von der konvexen Seite der Bogen sowie aus ihren Endverästlungen entspringen in regelmäßigen Abständen peripherisch verlaufende Äste, die Arteriae interlobulares (Fig. 285, 293), welche nach den Seiten hin kleine Zweige abgeben, deren jeder einen Glomerulus (Fig. 285) speist. Jede Art. interlobularis löst sich in Endäste auf, die zum Teil in die Tunica albuginea gehen, zum Teil in die Kapillaren der Rindensubstanz sich fortsetzen oder auch das Vas afferens eines Glomerulus bilden.
Durch diese Anordnung der Arterienäste wird eine Versorgung des Rindenkapillarnetzes mit Blut auch dann bis zu einem gewissen Grade gewährleistet, wenn die Glomeruli durch Erkrankung ausgeschaltet sind.
Jeder Glomerulus entsteht durch rasche Teilung einer Arterie in eine Anzahl kleiner kapillarer Zweige, die alsbald wieder zu einem aus der Mitte des Glomerulus herauskommenden (arteriellen) Gefäße zusammentreten; man nennt dieses letztere das Vas efferens (Fig. 285, 293); es ist etwas schwächer als das den Glomerulus speisende Gefäß, welches Vas afferens heißt (Fig. 285, 293).
Die Wandung der Kapillaren des Glomerulus soll aus einer gemeinschaftlichen Zytoplasmamasse ohne Zellgrenzen bestehen.
Jeder Glomerulus ist ein arterielles Wundernetz, d. i. ein Gefäßnetzwerk, welches den Verlauf eines Gefäßstammes plötzlich unterbricht. Es gibt auch venöse Wundernetze. Bei Hunden und Katzen kommen in der Niere auch Wundernetze vor, die in keiner Beziehung zu Harnkanälchen stehen, d. h. die von keiner „Kapsel“ umfaßt werden.
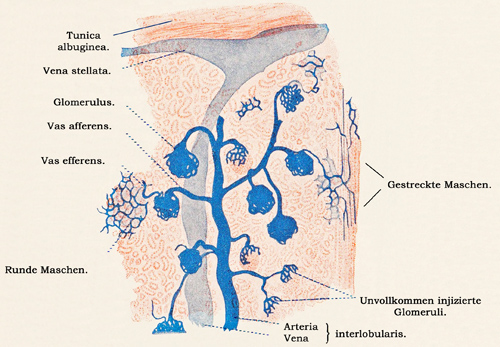
Fig. 293.
Stück eines Schnittes durch die Rinde einer injizierten Niere des erwachsenen Menschen. 30mal vergrößert. Technik Nr. 152, S. 390.
Das Vas efferens des Glomerulus mündet in das Kapillarnetz ein, welches im Bereiche der Markstrahlen gestreckte Maschen, im Bereiche der gewundenen Harnkanälchen runde Maschen bildet, und in das auch die oben erwähnten anderen Zweige des Art. interlobularis einmünden. Die Ableitung des Blutes aus dem Kapillarnetz übernehmen Venen, Venae interlobulares (Fig. 285, 293), welche dicht neben den Arteriae interlobulares liegen und, auch im weiteren Verlaufe sich an der Seite der Arterien haltend, in die Venae arciformes münden; diese letzteren nehmen auch kleine Venen auf, die aus dem Zusammenfluß der in den tieferen Rindenpartien befindlichen Kapillaren entstehen. Die Venen der äußersten Rinde vereinigen sich zu sternförmig gestellten Wurzeln, Venae stellatae (Verheynii), welche mit den Venae interlobulares zusammenhängen. Die vorstehend beschriebene Gefäßausbreitung ist lediglich in der Rindensubstanz und in den Markstrahlen gelegen; die Marksubstanz bezieht ihr Blut: 1. durch Ausläufer aus den Rindenkapillaren (Fig. 285, a) und 2. durch die Arteriolae rectae, welche teils direkt aus zentralverlaufenden Ästchen der Art. arciformes (Fig. 285, b) oder der Art. interlobulares (c) oder aus den Vasa efferentia der tiefstgelegenen, bei Tieren relativ größeren Glomeruli (d) kommen. Die Venen der Marksubstanz wurzeln in einem weitmaschigen, die Ductus papillares umspinnenden Netze und münden in die Venae arciformes. Die Vena renalis und ihre Verzweigungen sind klappenlos. Direkte Verbindungen zwischen Arterie und Vene kommen sowohl in der Tunica albuginea als auch im Innern der Niere vor.
Die Lymphgefäße sammeln sich aus einem in der Rinde befindlichen Netze geschlossener Kapillaren (ein gleiches Netz scheint auch im Marke vorhanden zu sein); die daraus entspringenden Stämmchen laufen mit den Blutgefäßen, ohne adventitielle Lymphräume (S. 179) zu bilden, und treten am Hilus aus. Außer diesen tiefen Lymphgefäßen gibt es noch zwei oberflächliche Kapillarnetze, eines in der Capsula adiposa, eines in der Capsula fibrosa (letzteres steht mit dem Rindenkapillarnetz in Verbindung). Die daraus entstehenden Stämmchen münden in benachbarte Lymphknoten.
Die Niere ist außerordentlich reich mit Nerven versehen. Die teilweise markhaltigen Nerven verlaufen entweder mit den Blut- und Lymphgefäßen in der bindegewebigen Hülle der Niere, oder sie bilden ein mit sympathischen Nervenzellen untermischtes Geflecht im Hilus, an dessen Herstellung sowohl die das Nierenbecken versorgenden Äste, wie auch die die Blutgefäße begleitenden Nerven teilnehmen. Im Innern der Niere bilden die Nerven Geflechte, welche die Arterien bis zu den Nierenkörperchen umstricken (Fig. 294). Auch die Wandungen der Venen und der Kapillaren sind von Nerven umsponnen, von denen feine Äste abzweigen, welche an den geraden und besonders an den gewundenen Harnkanälchen epi- und hypolemmale (S. 269) Geflechte bilden, von denen feine, interepithelial endigende Nervenfäden ausgehen.
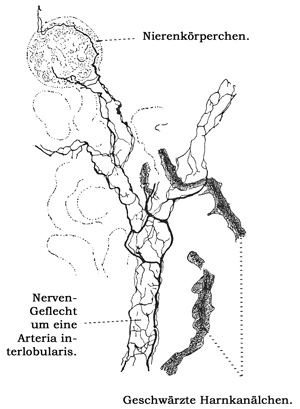
Fig. 294.
Schnitt durch die Niere einer Maus. 240mal vergrößert. Technik Nr. 153, S. 390.
Die ableitenden Harnwege.
Nierenkelche, Nierenbecken, Ureter und Blase haben einige gemeinsame Merkmale, die voraus besprochen werden sollen: das Epithel und den Muskelgehalt ihrer Wandung.
Das Epithel (als „Übergangsepithel“ bezeichnet) vermag sich den wechselnden Füllungszuständen anzupassen, besitzt aber außerdem die größere Widerstandsfähigkeit (hier wohl gegen die reizende Wirkung des Harnes) eines geschichteten Epithels. Das Epithel kontrahierter oder nur mäßig gefüllter Harnblasen erscheint auf senkrechten Schnitten (Fig. 295a) einem geschichteten Pflasterepithel ähnlich, nur mit dem Unterschiede, daß die Zellen der oberflächlichen Schicht zylindrische oder kubische Elemente oder auch dicke Platten sind.
Es ist durch sorgfältige Untersuchungen nachgewiesen worden, daß in Wirklichkeit nur zwei Schichten vorliegen, deren Formen je nach der Füllung der Blase außerordentlich wechseln. Bei leerer, stark kontrahierter Blase sind die Zellen der oberflächlichen Schicht auf Schnitten kubisch, zylindrisch, an ihrer Unterfläche oft mit Vertiefungen und Fortsätzen versehen, an welche die Zellen der tieferen Schicht ansetzen. Diese letzteren sind schlanke, in der Umgebung des Kernes oft dickere Zellen; der meist einfache Kern liegt bald am oberen, bald am unteren Ende, bald in der Mitte der Zelle. Dadurch wird auf Schnitten das täuschende Bild eines mehrschichtigen Epithels hervorgerufen. Bei stark gefüllter Blase (Fig. 295b) sind die oberflächlichen Zellen ganz abgeplattet; die tiefen Zellen sind jetzt niedrig, kubisch, ihre querovalen Kerne liegen in einer Reihe. Zwischen diesen beiden Extremen bestehen alle Übergänge.
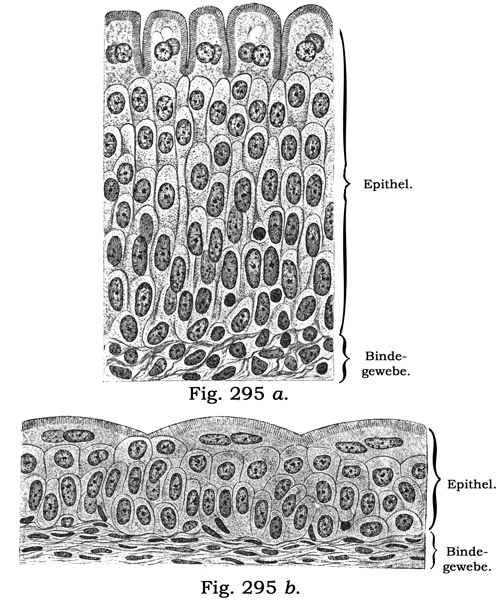
Fig. 295a. Fig. 295b.
Epithel der Harnblase (sogenanntes Übergangsepithel) bei kontrahierter (a) und bei gedehnter (b) Blasenwand. 500mal vergrößert. Technik Nr. 110, S. 289.
Mit dem Nachweis, daß das Blasenepithel in Wirklichkeit zweischichtig ist, findet die schon früher bekannte Tatsache, daß die Schlußleisten nicht nur an der Oberfläche, sondern auch in der Tiefe Netze bilden, eine befriedigende Erklärung: das kommt eben nur bei kontrahierter Blase vor; an der gespannten Blase liegt das Netz an der Oberfläche.
In den Epithelzellen, besonders in jenen der oberflächlichen Schicht, lassen sich oft Körnchen nachweisen, die möglicherweise Sekretvorstufen sind. Die Zellen der oberflächlichen Schicht sind außerdem durch dunklere Färbung ihres Zytoplasmas, durch einen zeitweise vorhandenen Kutikularsaum (Fig. 295), sowie durch den häufigen Besitz mehrerer, durch Amitose (Fig. 17, S. 69) entstandener Kerne ausgezeichnet.
In den oberflächlichen Schichten der Tunica propria der Blase (auch des unteren Nierenbecken- und oberen Ureterabschnittes) finden sich runde oder längliche Körper: Sprossen des Oberflächenepithels, zum Teil ohne Lumen, Zäpfchen, zum Teil hohl, Krypten, deren Lumen Sekret, eine kolloide Substanz, enthält. Diese Bildungen sind die ersten Entwicklungsstadien von Drüsen, die jedoch spät, erst bei Erwachsenen, aus dem Grunde der Krypten hervorsprossen und verästelte, mit Zylinderepithel ausgekleidete Schläuche sind. Solche echten Drüsen finden sich nur in der Harnblase, und zwar am Fundus, am Trigonum und am Urethraanfang, woselbst sie alle Übergänge zu wohlentwickelten Prostatadrüsen (S. 402) zeigen.
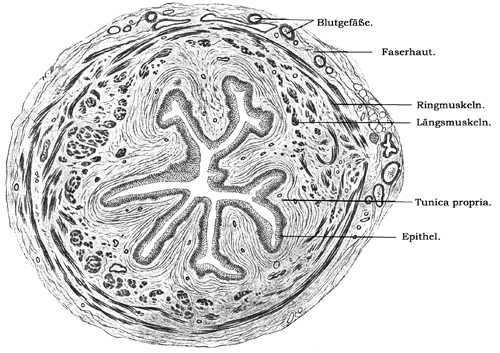
Fig. 296.
Querschnitt durch den menschlichen Ureter. 18mal vergrößert. Technik Nr. 110, S. 289.
Das zweite wichtige Merkmal der ableitenden Harnwege ist die glatte Muskulatur, die eine Kontraktilität dieses ganzen Hohlraumsystems bewirkt; hierdurch wird der Abfluß des Harnes befördert. Die Anordnung der zu Bündeln zusammengelagerten Muskulatur ist aber nicht so regelmäßig wie beim Darm; vielmehr durchflechten sich die Bündel, zwischen denen reichlich Bindegewebe liegt, in komplizierter Weise. Trotzdem läßt sich eine Schichtung an manchen Teilen (besonders Ureter) nachweisen.
An den Nierenpapillen bilden Muskelfasern zirkuläre Züge, die den Harn aus den Papillen herausdrücken können. An Nierenbecken und Ureter kann man eine innere Längslage und eine äußere, zirkuläre Lage glatter Muskelfasern unterscheiden, welch letzterer in der unteren Hälfte des Ureter noch längsverlaufende Muskelzüge aufliegen. Das in der Harnblasenwand verlaufende, sogenannte „Wandstück“ des Ureter besitzt nur Längsmuskeln, die nicht mit den Muskeln der Harnblase zusammenhängen, sondern frei in der Tunica propria der Blasenschleimhaut enden. Ihre von den Harnblasenmuskeln unabhängige Kontraktion öffnet die Ureterenmündung.
An der Blase besteht die Muskelschichte ebenfalls aus einer inneren und äußeren Längslage, welche eine Ringlage zwischen sich fassen. Die Lagen sind derart miteinander verflochten, daß eine strenge Abgrenzung derselben nicht möglich ist. Am Blasengrunde verstärkt sich die innere Längsmuskellage; die Ringmuskelschicht bildet um den Anfang der Harnröhre den nicht immer deutlichen M. sphincter vesicae internus.
Der Gesamtaufbau der Wandung läßt die allgemeinen Charaktere erkennen: Die Schleimhaut, deren Tunica propria aus faserreichem Bindegewebe besteht, enthält auch Lympho- und Leukozyten, in der Blasenwandung sogar Solitärknötchen. Da eine Muscularis mucosae fehlt, ist mikroskopisch keine scharfe Grenze zur Submucosa zu erkennen. Die Muskelhaut (s. oben) ist außen von einer Faserhaut umschlossen, die, aus lockerem Bindegewebe bestehend, die Verbindung mit der Umgebung herstellt und an den intraperitonealen Flächen dieses Systems von Serosaepithel überkleidet ist.
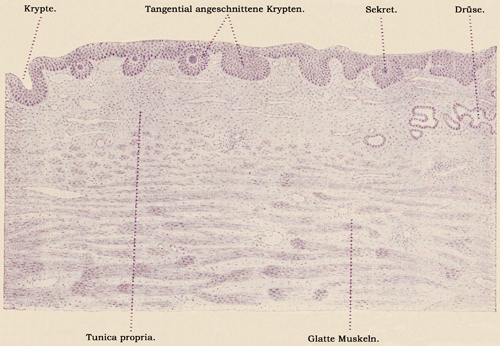
Fig. 297.
Schnitt durch den Fundus der Harnblase eines erwachsenen Menschen. 48mal vergrößert. Technik Nr. 110, S. 289.
Blut- und Lymphgefäße finden sich besonders reichlich in der Schleimhaut; die direkt unter dem Epithel gelegenen Blutkapillaren ragen zuweilen sogar etwas gegen das Epithel vor und imponieren, besonders im Nierenbecken, so als „intraepitheliale Blutgefäße“.
Der hinteren, unteren Blasenwandung sind zahlreiche zu Gruppen angeordnete Ganglienzellen eingelagert; besonders häufig sind sie an der Einmündungsstelle der Ureteren zu finden. Man kann diese Ganglien den automatischen Zentren der Darmwandung vergleichen. Die Ganglienzellen zeigen den multipolaren Typus der sympathischen Ganglienzellen. Von ihnen gehen motorische Zweige an die Muskelfasern. Außerdem gehen von buschartigen Endigungen in der Tunica propria sensible Nervenfasern aus.
Die Harnröhre des Weibes besteht aus Schleimhaut und einer mächtigen Muskelhaut. Die Tunica propria mucosae wird durch ein feinfaseriges, mit Zellen reich untermischtes Bindegewebe hergestellt, das sich an der Oberfläche zu zahlreichen, an der äußeren Harnröhrenmündung besonders wohl entwickelten Papillen erhebt. Das Epithel ist individuell verschieden, entweder geschichtetes Plattenepithel oder häufiger einschichtiges Zylinderepithel, verästelte, tubulöse Einzeldrüsen sind nur in geringer Anzahl vorhanden. Kleine Gruppen solcher finden sich an der Harnröhrenmündung; sie werden „periurethrale“ Drüsen genannt. Die Muskelhaut besteht aus einer inneren Längs- und einer äußeren Kreislage glatter Muskelfasern, zwischen denen ein mit vielen elastischen Fasern vermischtes, derbes Bindegewebe sich ausbreitet. Die Schleimhaut ist reich an venösen Blutgefäßen, deren Netze sich bis in die Längsmuskelschicht hinein erstrecken; dadurch wird eine dem Corpus cavernosum der männlichen Harnröhre ähnliche Bildung, das Corpus spongiosum, hergestellt.
Die Harnröhre des Mannes (besser der „männliche Sinus urogenitalis“) besteht, wie die des Weibes, aus Schleimhaut und Muskelhaut; jedoch gestaltet sich in den einzelnen Bezirken ihr Bau verschieden. In der Pars prostatica ist das Epithel ähnlich dem der Harnblase; es geht in der Pars membranacea allmählich in ein mehrreihiges Zylinderepithel über, welches sich in der Pars cavernosa zu einem einschichtigen Zylinderepithel umgestaltet und distal von der Mündungsstelle der Gland. bulbourethrales wieder in ein mehrreihiges Zylinderepithel übergeht. In allen diesen Bezirken kann das Epithel Gruppen von Becherzellen enthalten. Von der Fossa navicularis an ist das Epithel geschichtetes Plattenepithel. Inseln solchen Epithels kommen auch im Zylinderepithel des vorderen Abschnittes der Pars cavernosa vor. Die an elastischen Fasern reiche Tunica propria trägt hauptsächlich in der Fossa navicularis wohl entwickelte Papillen. Verästelte Einzeldrüsen, Gland. urethrales (Litrii) finden sich vereinzelt in der Pars cavernosa (Fig. 309). Zwischen diesen Drüsen und den von einem einfachen Zylinderepithel ausgekleideten Schleimhautbuchten („Lakunen“) bestehen Übergänge.
Als „paraurethrale Gänge“ bezeichnet man abnorme, den Lakunen im Bau gleichende Gänge, die statt in die Urethra neben dem Orificium urethrae externum münden. Zum Teil handelt es sich auch um Einstülpungen der äußeren Haut, mit der sie dann im Bau völlig übereinstimmen.
Die Muskelhaut besteht in der Pars prostatica innen aus einer glatten Längs- und außen aus einer ebensolchen Ringfaserschicht. Beide sind noch in der Pars membranacea gut ausgebildet, hören aber in der Pars cavernosa allmählich auf, indem zuerst die im Bulbus urethrae noch ansehnliche Ringfaserlage ganz verschwindet; in den vorderen Partien der Pars cavernosa finden sich nur einige, schräg- und längsverlaufende Bündel. Die Schleimhaut der männlichen Harnröhre ist reich an Blutgefäßen (s. Corp. cavernos. urethrae S. 405). Die Lymphgefäße liegen unter den Blutgefäßen. Die Nerven bilden mit Nervenzellen untermischte Geflechte; die daraus entspringenden marklosen Fasern enden teils frei, teils (in der Pars prostatica und membranacea) in besonderen Endapparaten (vgl. S. 268).
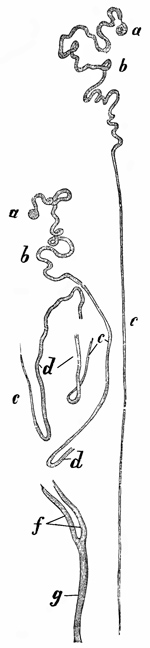
Fig. 298.
Harnkanälchen eines 4 Wochen alten Kaninchens isoliert. 30mal vergr. a Nierenkörperchen, b Hauptstück, c Henlesche Schleife, proximaler, d distaler Abschnitt, f Sammelrohre, g Ductus papillaris.
Technik.
Nr. 149. Harnkanälchen isoliert. Am besten eignen sich Nieren von Maus oder Kaninchen. Die Niere wird halbiert, a die eine Hälfte zur frischen Untersuchung zurückgestellt, b) die andere in ca. 30 ccm reine Salzsäure (von 1,124 spez. Gewicht) eingelegt.
a) Erbsengroße Stückchen werden in einem Tropfen der 1%igen Kochsalzlösung zerzupft; man sieht bei schwacher Vergrößerung die roten Glomeruli, die gewundenen und geraden Harnkanälchen; die Tubul. contorti sind dunkel, körnig, die anderen Abteilungen heller. Bei starker Vergrößerung sieht man deutlich die Kerne der hellen Abschnitte der Harnkanälchen, die Zellgrenzen sind am besten in den Sammelrohren erkennbar. In den Hauptstücken sieht man nur die feine Strichelung der Basen der Epithelzellen; Zellgrenzen und Kerne dagegen sind nicht sichtbar.
b) Nach ca. 2 Stunden (genauere Vorschriften lassen sich hier nicht angeben; oft muß der Aufenthalt in der Säure, wie im Wasser erheblich [bis zu 20 Stunden und mehr] verlängert werden) wird die rot aussehende Nierenhälfte in eine Schale mit ca. 50 ccm destillierten Wassers gebracht, woselbst sie rasch schmutzig grau wird, mit schmieriger Oberfläche. Wasser wechseln! Nach wenigen Minuten kann man mit Nadeln kleine Stücke ablösen, die sich leicht in Wasser auf dem Objektträger in Kanälchen auflösen lassen. Will man Harnkanälchen in größerem Zusammenhange erhalten, so übertrage man ein ca. 2 ccm großes Nierenstückchen in ein Uhrschälchen, in welches man ein großes Deckglas und so viel destilliertes Wasser gebracht hat, daß dieses das Deckgläschen oben überspielt. Nun sucht man mit Nadeln die Kanälchen zu isolieren. Ist die Isolation gelungen — man kann sich davon mit Lupe oder schwacher Vergrößerung überzeugen — so saugt man vorsichtig mit einer Pipette oder mit Filtrierpapier das Wasser aus dem Uhrschälchen und zuletzt vom Deckgläschen, nimmt dieses heraus, reinigt dessen freie Fläche und setzt es mit den anhaftenden Harnkanälchen leise auf einen Objektträger, auf welchen man vorher einen Tropfen verdünnten Glyzerins gebracht hat. Man kann nachher mit Pikrokarmin unter dem Deckglase färben (S. 47), (Fig. 298).
Nr. 150. Rinden- und Marksubstanz. Nach Nr. 110, S. 289 fixierte Nieren betrachte man auf dicken und dünnen Schnitten, die Mark- und Rindensubstanz enthalten. Zweckmäßig sind Querschnitte in verschiedenen Höhen einer Papille zum Studium der Markkanälchen (Fig. 292). Die sehr zarten Bürstenbesätze (Fig. 289) sind nur bei sehr feinen Schnitten zu sehen. Sie sind oft abgefallen. Zu ihrer Darstellung bedarf es besonderer Methoden (vgl. Sauer, Arch. f. mikros. Anatomie Bd. 46, S. 116).
Markstrahlen und Henlesche Schleifen sind besonders schön an gefärbten, senkrechten Schnitten von Nieren junger Tiere zu sehen.
Nr. 151. Farbstoffspeicherung in der Niere. Die Niere einer nach Nr. 13, S. 90 behandelten weißen Maus isoliere man nach Nr. 149; der Farbstoff bleibt so lange in den Zellen enthalten, daß man sehr schöne Bilder von seiner typischen Anordnung erhält.
Nr. 152. Nierengefäße. Man kann eine Niere isoliert injizieren (S. 43), und 4 Wochen in ca. 300 ccm Müllerscher Flüssigkeit fixieren (Weiterbehandlung Nr. 6, S. 15). Makroskopisch sind die Flächenansichten der Venae stellatae zu beobachten. Einbettung in Paraffin. Ungefärbte, dicke Längs- und Querschnitte sind mit Lupe (s. S. 39) und schwachen Vergrößerungen zu studieren (Fig. 293).
Nr. 153. Nerven der Niere. Kleine Stückchen sind nach Golgis Methode (S. 35) (3-6 Tage Aufenthalt in der osmiobichromischen Mischung) zu behandeln. Resultat Fig. 294.
Nr. 154. Epithelzellen des Nierenbeckens, des Ureters und der Blase. Von jedem dieser Teile ist ein ca. 1 qcm großes Stückchen (Ureter aufschneiden) in ca. 30 ccm Ranvierschen Alkohol einzulegen. Isolation und Färbung mit Pikrokarmin (S. 47). Konservieren in verdünntem, angesäuertem Glyzerin (S. 48).
Nr. 155. Weibliche Harnröhre. Man schneide ein ca. 2 cm langes Stück der weiblichen Harnröhre zusammen mit der anhängenden vorderen Vaginalwand aus und behandle es wie Nr. 110, S. 289.
Nr. 156. Männliche Harnröhre. 1-2 cm lange Stücke der Pars prostatica, Pars membranacea, Pars cavernosa und der Fossa navicularis behandeln wie Nr. 110, S. 289. Man verwechsle Querschnitte der Lacunae urethrales (Morgagni) (d. s. blinde Ausbuchtungen der Harnröhrenschleimhaut) nicht mit Drüsendurchschnitten.
VIII. Geschlechtsorgane.
A. Die männlichen Geschlechtsorgane.
Die Hoden.
Die Parenchymteile des Hodens entwickeln sich in früher Embryonalperiode aus dem Peritonealepithel, verlieren aber sehr schnell den Zusammenhang mit dem Mutterboden und werden, von Bindegewebe umgeben, zu stark gewundenen, vielfach untereinander in Verbindung stehenden, Kanälchen (Tub. contorti testis). Sekundär treten sie mit einem ebenfalls vom Peritonealepithel in selbständiger Bildung entstandenen Hohlraumsystem in Verbindung, dem Rete testis (Halleri); dieses gewinnt später einen Zusammenhang mit Kanälchen, die dem Material der Urniere entstammen, so daß dann die Bildungsprodukte der Hodenkanälchen als Ausführungsgänge das ihnen ursprünglich fremde Urnierenkanalsystem benutzen.
Soll trotz dieser Entwicklungsweise der Hoden mit anderen Drüsen in eine Reihe gestellt werden, so muß man doch hervorheben, daß die Ausführwege den Hoden nicht, wie sie es bei anderen Drüsen tun, mit dem Mutterboden verbinden, sondern erst sekundär mit den Hodenkanälchen in Beziehung treten.
Die Bezeichnung des Hodens als Drüse (Keimdrüse) gründet sich aber einmal auf den groben Aufbau, der lange gewundene Endstücke (die Tub. contorti) und ausführende Teile unterscheiden läßt. Zum zweiten produziert die Keimdrüse, wie typische Drüsen, Stoffe; hier sind dies aber organisierte Gebilde, die Spermien. Endlich wissen wir, daß der Hoden in seiner Beeinflussung des Gesamtorganismus Funktionen ausübt, die den Vorgängen der inneren Sekretion an die Seite gestellt werden müssen.
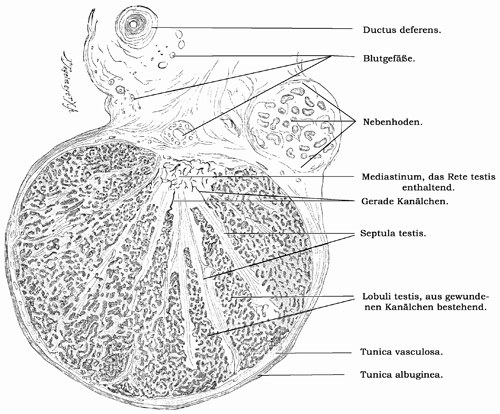
Fig. 299.
Querschnitt des Hodens eines neugeborenen Knaben. 10mal vergrößert. Technik Nr. 157, S. 425.
Die Hoden (Testes) werden von einer bindegewebigen Hülle umgeben. Diese Hülle, die Tunica albuginea s. fibrosa (Fig. 299), ist eine derbe Haut, welche das Hodenparenchym rings einschließt und an einer Seitenfläche einen dickeren, in das Innere des Hodens vorspringenden Wulst, das Mediastinum testis (Corpus Highmori), entwickelt. Von diesem gehen eine Anzahl Blätter aus, die Septula testis, welche divergierend gegen die Tunica albuginea ziehen und so das Hodenparenchym in pyramidenförmige Läppchen abteilen, deren Basis gegen die Tunica albuginea, deren Spitze gegen das Mediastinum gerichtet ist. Die Tunica albuginea besteht aus straffaserigem Bindegewebe und zahlreichen, mit den Jahren sich mehrenden, elastischen Fasern; sie wird an ihrer freien Oberfläche von einer einfachen Lage platter Epithelzellen überzogen, die den Epithelzellen der serösen Häute (S. 356) entsprechen, und geht nach innen allmählich in eine lockere, mit elastischen Fasern untermengte, gefäßreiche Bindegewebslage, die Tunica vasculosa, über; dieselbe hängt mit den Septula testis zusammen und ist beim Neugeborenen als eine besondere Schicht gut zu unterscheiden (Fig. 299). Das aus derbem Bindegewebe und zahlreichen, elastischen Fasern aufgebaute Mediastinum schließt ein aus vielfach miteinander anastomosierenden Kanälen gebildetes Netzwerk, das Rete testis (Halleri), in sich. Die Septula testis bestehen aus Bindegewebsbündeln. welche mit dem die einzelnen Hodenkanälchen umstrickenden, lockeren Bindegewebe zusammenhängen.
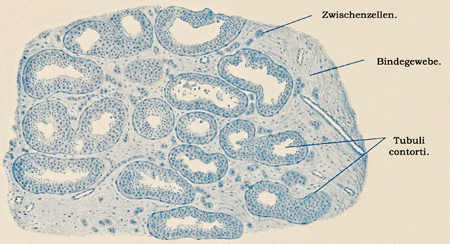
Fig. 300.
Aus einem Querschnitte des Hodens eines 22jährigen Hingerichteten. 50mal vergrößert. Technik Nr. 158, S. 425.
Das „interstitielle“ Bindegewebe ist reich an zelligen Elementen, die teils in Form platter Bindegewebszellen, teils als rundliche, Pigment- oder Fettkörnchen, im geschlechtsreifen Hoden zuweilen Kristalloide führende Zellen (sogenannte „Zwischenzellen“) auftreten (Fig. 300, 301).
Kristalloide Einlagerungen im Zellinnern sind im Pflanzenreiche häufiger, sind aber auch in anderen Zellen des Hodens (Spermatogonien, Sertolizellen), in der Prostata, ferner in den Kernen und im Zytoplasma der Nervenzellen des Igels und im Zytoplasma des Linsenepithels gefunden worden.
Wir betrachten die Zwischenzellen als besondere Funktionszustände von Bindegewebszellen, deren Gestalt und Einschlüsse darauf hinweisen, daß sie in den lebhaften Stoffwechsel des Hodens in irgendeiner Weise eingeschaltet sind. Für die, gegenüber anderen Geweben außerordentlich gesteigerten Vorgänge der Zellvermehrung und -differenzierung (Spermiogenese s. u.) muß ein äußerst lebhaftes Zu- und Abströmen von Stoffen im Bindegewebe des Hodens vorausgesetzt werden. Die Zwischenzellen dürften ihr Aussehen der Speicherung solcher Substanzen verdanken, die bei der Spermiogenese an ihnen vorbeiströmen. Durch dieses Speicherungsvermögen, das sich auch auf experimentell zugeführte Farbstoffe erstreckt, bekunden sie eine nahe Verwandtschaft zu anderen Bindegewebszellformen (s. S. 93).
Die Beobachtungen und Experimente, aus denen viele Autoren auf eine innersekretorische Tätigkeit der Zwischenzellen geschlossen haben, lassen sich auch nach der oben gegebenen Deutung erklären; für die Annahme, daß diese Zellen es sind, die die auffallende Rolle des Hodens im Stoffwechsel des Gesamtorganismus („innere Sekretion“ des Hodens) bewirken, lassen sich keine ausreichenden Gründe anführen.
Die Hodenkanälchen lassen während ihres Verlaufes drei Abschnitte unterscheiden; sie beginnen 1. als Tubuli contorti, werden dann 2. zu Tubuli recti, welche sich 3. in das Rete testis fortsetzen. Die Tubuli contorti sind drehrunde, ca. 140 µ dicke Röhrchen, über deren Anfang man noch nicht hinreichend orientiert ist; wahrscheinlich hängen sie an der Peripherie unter der Tunica vasculosa miteinander vielfach zusammen und bilden so ein Netzwerk, aus welchem zahlreiche Kanälchen abbiegen und unter vielfachen Windungen gegen das Mediastinum ziehen. Während dieses Verlaufes tritt eine Verminderung der Zahl der Kanälchen ein, indem dieselben fortgesetzt unter spitzem Winkel sich miteinander vereinigen. Nicht weit vom Mediastinum entfernt gehen die gewundenen Kanälchen in die Tubuli recti über (Fig. 299), welche bedeutend verschmälert, 20-25 µ dick, nach kurzem Verlaufe in das Mediastinum eindringen und hier das Rete testis bilden, dessen Kanäle 24-180 µ messen.
Die Tubuli contorti sind die Bildungsstätten der Samenfäden (Spermien); die hierzu notwendigen Umwandlungsprozesse, die wir unter dem Namen Spermiogenese zusammenfassen, spielen sich im Innern der Kanälchen ab, die von einer ziemlich derben Hülle umgeben werden (Fig. 301).
Die Hülle besteht aus mehrfachen Lagen platter Bindegewebezellen, die beim Erwachsenen von vielen elastischen Fasern durchflochten werden; nach innen zu gegen das Keimepithel ist die Hülle zu einer feinen Membrana propria verdichtet.
Das Keimepithel läßt schon beim Neugeborenen zwei Arten von membranlosen, feinkörnigen Zellen unterscheiden: die Sertolischen Zellen („Follikelzellen“) und die Samenzellen. Erstere sind an der Erzeugung der Samenelemente nur indirekt beteiligt; die Samenzellen sind es dagegen, die das wechselnde Bild, das dieses Epithel darbietet, bestimmen.
Vor Eintritt der Geschlechtsreife sind die Samenzellen relativ gleichförmig gebaute Elemente, die wir als Spermatogonien (Ursamenzellen) bezeichnen. Im Epithel des geschlechtsreifen Hodens liegen die Spermatogonien wie die Keimschicht in anderen mehrschichtigen Epithelien dem Bindegewebe (Membrana propria) am meisten genähert; sie sind durch ihre runden chromatinreichen Kerne von den zwischen ihnen liegenden Sertolischen Zellen leicht zu unterscheiden.
Die Spermatogonien sind das Ausgangsmaterial für die Bildung der Spermien; sie vermehren sich durch mitotische Teilung fortdauernd. Ein Teil von ihnen ist aber während der geschlechtsreifen Periode jeweils bereit, das Stadium der Vermehrung (I. Stadium der Spermiogenese) abzuschließen und sich durch Heranwachsen von Kern und Zelleib zu größeren Formen, den Spermatozyten, zu gestalten (II. Stadium oder Stadium des Wachstums). Die Spermatozyten liegen in der nächstinneren Schicht, häufig in mehreren Lagen übereinander, und sind an der Größe ihrer Zellkerne deutlich zu erkennen; sehr häufig sind diese Kerne in Mitose fixiert.
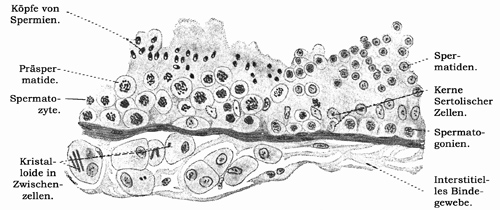
Fig. 301.
Stück eines Längsschnittes durch ein gewundenes Hodenkanälchen eines Hingerichteten. 360mal vergrößert. Technik Nr. 158, S. 425.
Zum Unterschied von den Spermatogonien können von den Spermatozyten durch Mitose nicht mehr ihnen gleichende Formen, also wieder Spermatozyten gebildet werden; vielmehr führt jede Spermatozytenteilung unmittelbar zur Bildung der Spermien hin, indem nun durch den Prozeß der Reifung (III. Stadium der Spermiogenese) aus jeder Spermatozyte vier Spermien entstehen.
Hierzu sind zwei kurz aufeinanderfolgende (sogenannte Reife-) Teilungen notwendig; es liegt im Prinzip des Vorganges begründet (s. darüber die genaueren Darlegungen in den Lehrbüchern der Entwicklungsgeschichte), daß die Teilungen unmittelbar aufeinanderfolgen, ohne daß ein längeres Ruhestadium zwischen ihnen liegt, welches sonst dazu dient, die Teilzellen zur Größe der Mutterzelle heranwachsen zu lassen. Die Kürze der Ruhepause zwischen den Reifeteilungen bewirkt einmal, daß die erste Teilform, die Präspermatide — eine Spermatozyte liefert deren zwei — nur selten in den Präparaten aufzufinden ist, während die aus den zwei Präspermatiden hervorgehenden vier Spermatiden in den inneren Zonen des Keimepithels meist in großer Zahl angetroffen werden (Fig. 302). Die zweite leicht ersichtliche Folge ist die Verkleinerung der Teilprodukte gegenüber der Ausgangsform: die Kerne und die Zelleiber der Spermatiden fallen durch ihre geringe Größe neben den Spermatozyten auf. Die wichtigste Folge endlich, auf die wir hier nicht näher eingehen können, ist die Verminderung der Chromosomenzahl auf die Hälfte.
Während der Spermienbildung wird, nach allem, was wir wissen, festgelegt, welcher Teil der väterlichen Eigenschaften einem Spermium mitgegeben wird, das nun durch den Vorgang der Befruchtung sich mit einer artgleichen Eizelle zur Bildung eines neuen Individuums verbinden kann. Deshalb ist die Spermiogenese (ebenso wie die Oogenese) für die Fragen der Vererbung von größter Bedeutung. Auf die überreichen, zum Teil äußerst wertvollen Befunde kann hier nicht eingegangen werden (vgl. die reiche Literatur über Vererbung).
Wird so durch die drei ersten Stadien der Spermiogenese die Zahl und das Erbgut der Spermien festgelegt, so ist nun noch ein äußerst kompliziert ablaufendes Stadium der Umbildung (IV. Stadium) notwendig, um den Spermien die Gestalt zu geben, die ihnen die Ausführung ihrer wichtigen Aufgabe ermöglicht.
Jede Spermatide besitzt im Bau des Zytoplasmas, des Kernes und des Zentralapparates noch die allgemeinen Eigenschaften einer Zelle; durch die Differenzierung zur Spermie werden aus diesem Material die Organellen gebildet, die das Spermium befähigen, trotz des langen Weges bis zu seinem Bestimmungsorte, ans Ziel zu gelangen. Nur die Beobachtung der Umbildung ermöglicht es, in den fertigen Spermien die wesentlichen Bestandteile der Zellen wieder aufzufinden.
Der Zellkern der Spermatide verdichtet sich (er wird stärker färbbar, wobei die typische, chromatische Struktur zu einer homogenen Masse umgeformt wird), gleichzeitig verlängert er sich und nimmt eine eigenartige Form an. Er rückt an das eine Ende des Zelleibes, das zum Kopfteil des Spermiums wird. Im Anschluß an das eine der Diplosomen des Zentralapparates entsteht an einem dem Kerne abgewandten Ende des Zellkörpers ein fadenförmiger Anhang (Fig. 302), der unter fortwährender Verlängerung zum Schwanze des Spermiums wird, einer Organelle, mit deren Hilfe das Spermium Eigenbewegungen auszuführen imstande ist. Der Zytoplasmarest bleibt zwischen Kopf und Schwanzfaden erhalten und wird zu dem die Zentralkörperchen führenden Halsteil und zum Verbindungsstück. In dem letzteren liegen vorzugsweise die Plastosomen.
Bei diesen Umbildungsprozessen scheinen die Sertolischen Zellen, mit denen die Spermatiden, meist zu Vieren vereinigt, in Verbindung treten, eine Rolle zu spielen; die Vierergruppen sind in die Epithelmasse geradezu eingekeilt und hängen mit dem Zytoplasma einer Sertolizelle während der wesentlichen Umbildungszeit zusammen. Es ist nicht unwahrscheinlich, daß die Spermatiden auf diesem Wege die zu dem Differenzierungsvorgang wichtigen Stoffe erhalten.
Auf Querschnitten von Samenkanälchen sieht man nur je ein Stadium der Spermiogenese (Fig. 302), auf Längsschnitten dagegen sämtliche Stadien nebeneinander (Fig. 301), was für einen wellenförmigen Ablauf der Spermiogenese („Samenbildungswelle“) spricht.
Bei den Tieren mit deutlicher männlicher Brunstperiode fehlen in der Zwischenzeit in den Kanälchen die Spermien. Ist diese Zwischenzeit sehr lang, so finden sich nur den Spermatogonien gleichende Elemente und die zu Zylinderzellen umgebildeten Sertolischen Zellen. Das gleiche kann beim Menschen nach langem Siechtum und unter Umständen auch bei Greisen (am atrophisch-senilen Hoden) beobachtet werden. In letzterem Falle kommt es zu einer hyalinen Verdichtung der Bindegewebshülle und der Membrana propria unter gleichzeitiger Reduktion der elastischen Fasern und der Zwischenzellen einerseits und einer Vermehrung der Fettkörnchen andererseits. Die Samenzellen können schließlich völlig schwinden, so daß nur Sertolische Elemente zurückbleiben.
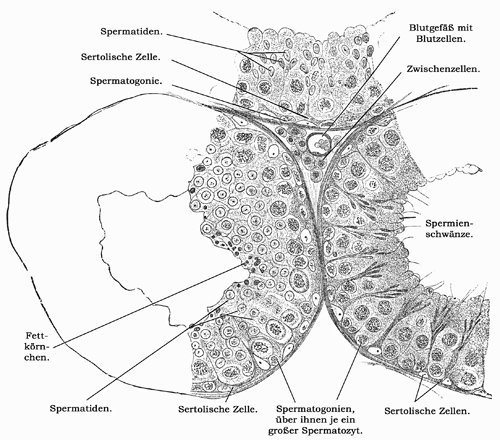
Fig. 302.
Durchschnitte von Hodenkanälchen einer Maus. 360mal vergrößert. Man beachte, wie die anfangs runden Kerne der Spermatiden (links unten) oval werden (oben) und sich zu Spermienköpfen umbilden (rechts unten). Technik Nr. 159, S. 425.
Das Keimepithel läßt sich nach dem Gesagten nur mit gewissen Einschränkungen als Epithel bezeichnen. Vor allem ist die Zellenproduktion hier in einem Maße gesteigert, wie es bei anderen Epithelien, wo die Zellvermehrung nur dem Ersatz untergehender Zellen dient, nicht vorkommt. Auch muß besonders darauf hingewiesen werden, daß hier die abgestoßenen Zellen eine höchst aktive Differenzierungsform darstellen, während sie bei anderen Epithelien dem Untergange geweiht sind. Über die Stoffwechselvorgänge im Keimepithel sind wir noch so mangelhaft unterrichtet, daß ein Vergleich mit anderen Epithelien in dieser Hinsicht nicht möglich ist.
Der Hoden übt auf den ganzen Organismus innersekretorische Einflüsse aus, die wesentlich zur Ausbildung der sogenannten sekundären Geschlechtsmerkmale beitragen. Diese Tatsache ist heute durch unzählige Experimente festgelegt. Unklar ist jedoch, welchem morphologischen Substrat des Hodens die Produktion der hier wirksamen Stoffe zugeschrieben werden muß. Die Gründe, die gegen die Zwischenzellen als innersekretorischer Elemente sprechen, sind teilweise oben (S. 393) dargelegt. Es muß aber zugegeben werden, daß wir auch über die Art, wie die Samenzellen innersekretorisch wirksam sein könnten, keine ausreichende Vorstellung besitzen. Entweder kann es sich hier um eine aktive Sekretion von seiten der Spermatogonien handeln; es wäre aber auch denkbar, daß Stoffe beim Zerfall derjenigen Samenzellen frei werden, die während der Spermiogenese in großer Zahl zugrunde gehen. Auch auf der Wirksamkeit solcher Zerfallstoffe könnte die Beeinflussung des Gesamtorganismus beruhen.
Die Tubuli recti und die Kanäle des Rete testis werden von einer einfachen Lage kubischer oder platter, Fettkörnchen enthaltender Epithelzellen ausgekleidet.
Die Arterien des Hodens sind Äste der A. spermatica interna, welche teils vom Mediastinum, teils von der Tunica vasculosa in die Septula testis eindringen und sich von hier aus in ein die Hodenkanälchen umspinnendes Kapillarnetz auflösen. Die daraus entspringenden Venen verlaufen mit den Arterien. Die zahlreichen Lymphgefäße bilden ein unter der Tunica albuginea gelegenes Netzwerk, welches mit den ziemlich dichten, die Samenkanälchen umstrickenden Lymphkapillaren in Zusammenhang steht. Die Nerven bilden Geflechte um die Blutgefäße; ob einzelne davon abzweigende Fasern die Membrana propria der Hodenkanälchen durchbohren und zwischen den Epithelzellen knopfförmig verdickt enden, ist noch nicht völlig sichergestellt.
Der Samen.
Das Sekret der Hoden, der Samen (Sperma), besteht fast allein aus den Samenfäden, den Spermien, stecknadelähnlichen, ca. 60 µ langen Gebilden, an denen wir Kopf, Hals und Schwanz unterscheiden (Fig. 303). Beim Menschen ist der Kopf 3-5 µ lang, 2-3 µ breit, abgeplattet, von der Seite gesehen birnförmig, das verschmälerte Ende nach vorn gerichtet, von der Fläche gesehen dagegen oval, vorn abgerundet und dort einen helleren Abschnitt enthaltend (Fig. 303, 1). Das vorderste Kopfende ist durch seine Festigkeit ausgezeichnet, die durch eine besondere Bildung, die (beim Menschen noch nicht sicher nachgewiesene) Kopfkappe, bedingt wird; im hinteren Abschnitt des Kopfes sind die Kernsubstanzen enthalten. Am Halse wird ein vorderes und hinteres Halsknötchen unterschieden, die den Zentralkörperchen entsprechen. Der Schwanz zeigt bei sehr starken Vergrößerungen einen seine ganze Länge durchsetzenden Faden, den Achsenfaden, der aus feinen Fibrillen zusammengesetzt ist. Man unterscheidet am Schwanze verschiedene Abschnitte: zunächst dem Kopfe liegt das drehrunde Verbindungsstück („Mittelstück“), welches 6 µ lang und kaum 1 µ, breit ist; dann folgt das 40-60 µ lange, sich nach hinten allmählich verschmälernde Hauptstück. Die Spitze des Schwanzes, das Endstück, wird durch den etwa 10 µ frei hervorragenden Achsenfaden gebildet. Die Spermien sind (wahrscheinlich wegen ihres Kalkgehaltes) durch ihre große Widerstandsfähigkeit ausgezeichnet. Die schlängelnden Bewegungen der Spermien kommen nur dem Schwanze zu, welcher den Kopf vor sich herschiebt; sie fehlen meist im reinen Sekret des Hodens und stellen sich erst ein bei Verdünnung des Samens, wie es bei der Entleerung auf natürlichem Wege durch Beimengung des Sekrets des Nebenhodens, der Samenleiterampullen, der Samenbläschen, der Prostata und der Bulbourethraldrüsen (Cowper) geschieht. In dieser Flüssigkeitsmischung erhält sich die Bewegung selbst noch einige Zeit (bis zu 3 Tagen) nach dem Tode, wie (eine Woche, vielleicht noch länger) im Sekrete der weiblichen Genitalien. Wasser sistiert die Bewegung, welche jedoch durch Zusatz mäßig konzentrierter, alkalisch reagierender tierischer Flüssigkeiten aufs neue angefacht werden kann; überhaupt sind die genannten Flüssigkeiten, ferner 1%ige Kochsalzlösung, den Bewegungen der Spermien günstig, während Säuren und Metallsalze die Bewegung aufheben. Bewegungslose Spermien zeigen häufig einen ösenartig eingerollten Schwanz (Fig. 303, 3).
Neben den typischen finden sich auch atypische Spermien, die entweder durch ihre Größe („Riesenspermien, Zwergspermien“) oder auch durch 2-4 Schwänze an einem Kopfe oder mehrere Köpfe an einem Schwanze, oder sonst durch abnorme Form sich auszeichnen. Auf die verschiedenen Formen der Tierspermien kann hier nicht eingegangen werden. Der bei Vögeln und geschwänzten Amphibien zuerst entdeckte Spiralfaden, der durch eine glashelle Membran mit dem Achsenfaden verbunden ist, ist auch bei Säugetieren gefunden worden und scheint ein, wenn auch in seiner Bedeutung noch unklares, wichtiges Formelement zu sein.
Die ableitenden Samenwege.
Die Spermien gelangen, im Rete testis aus allen Läppchen des Hodens zusammenkommend, von hier aus in ein Kanalsystem, das eine außerordentliche Weglänge besitzt. über das Geschehen in den verschiedenen Teilen dieses Kanalsystems sind wir fast ohne gesicherte Kenntnis.
Entwicklungsgeschichtlich stammt der Nebenhoden aus dem Baumaterial des kranialen Urnierenteiles, eine Tatsache, die auch in manchen Einzelheiten des Nebenhodenaufbaues zum Ausdruck kommt. Aus dem oberen Ende des Rete testis treten etwa 15 Ductuli efferentes testis hervor, die immer stärker sich schlängelnd ebensoviele konische Läppchen, Lobuli epididymidis, bilden. Die Summe der Läppchen stellt den Kopf des Nebenhodens dar. Aus der Vereinigung der Ductuli efferentes geht der Ductus epididymidis hervor, welcher, vielfach gewunden, Körper und Schwanz des Nebenhodens bildet und sich in den Ductus deferens fortsetzt.
Die Ductuli efferentes sind von einem ganz ungleichen, mit Schlußleisten versehenen Epithel ausgekleidet; es wechseln Gruppen einfachen zylindrischen Flimmerepithels mit solchen kubischer, zum Teil flimmerloser Zellen ab; letztere gewähren so das Bild alveolärer Einzeldrüschen, die nicht immer eine Ausbuchtung der Membrana propria bedingen (Fig. 305). Die Zellen selbst enthalten, abgesehen von einer sehr wechselnden Menge von Pigmentkörnchen, Körner, welche auf eine sekretorische Funktion schließen lassen; dafür spricht auch der Umstand, daß man oft statt der Flimmerhaare an der Oberfläche der Zellen hervorstehende blasige Fortsätze (Fig. 305) findet, die Sekrettropfen gleichen. Eine streifige Membrana propria und eine aus mehreren Lagen glatter Muskelfasern gebildete, von elastischen Fasern durchzogene Ringfaserschicht vervollständigt die Wandung der Ductuli efferentes.
Die elastischen Fasern treten wie auch diejenigen im Ductus epididymidis und deferens erst zu Beginn der Geschlechtsreife auf.
Die Einschlüsse (s. oben) in den Epithelzellen der Ductuli efferentes mahnen an die Verwandtschaft dieser Abschnitte mit den Hauptstücken der Niere (s. S. 378), mit denen diese Nebenhodenteile auch die Fähigkeit gemeinsam haben, Fremdsubstanzen (z. B. saure Farbstoffe) zu speichern. Im feineren Aufbau weichen die Hauptstückepithelien der Niere allerdings von denjenigen der Ductuli efferentes sehr ab.
Der Ductus epididymidis besitzt ein zweireihiges mit Schlußleisten versehenes Epithel (Fig. 304), dessen Elemente aus rundlichen Basalzellen und langen Zylinderzellen bestehen; letztere enthalten Sekretkörner und zuweilen Pigment und tragen an der Mitte ihrer Oberfläche lange Haare, die nicht flimmern und an fixierten Präparaten häufig zu einem kegelförmigen Fortsatz verklebt sind. Im Epithel finden sich teils geschlossene, teils an der Oberfläche mündende, röhren- oder schlauchförmige Gänge. Eine zarte Membrana propria und eine dicke Ringmuskellage vervollständigen die Wand des Ductus epididymidis, dessen Windungen durch lockeres Bindegewebe zusammengehalten werden; gegen den Samenleiter zu verdickt sich die Ringmuskellage.
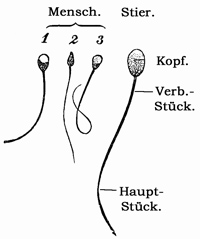
Fig. 303.
Spermien. 1. u. 3. von der Fläche, 2. von der Kante gesehen. 300mal vergr. Das Endstück, sowie die Grenzen dieser Teile sind bei dieser Vergrößerung noch nicht wahrzunehmen. Technik Nr. 161, S. 425.
Der Samenleiter wird von einem zweireihigen Zylinderepithel ausgekleidet; eine bindegewebige Tunica propria, der sich nach außen ein dichtes Geflecht elastischer Fasern anschließt, ferner eine innere, besonders im Anfangsteile des Samenleiters gut entwickelten Längslage, eine mittlere Ringlage und eine äußere Längslage glatter Muskelfasern, endlich eine bindegewebige, mit elastischen Fasern vermischte Adventitia bilden die Wandung (Fig. 306).
Die Adventitia enthält besonders in dem vom Hoden bis zum Leistenkanal verlaufenden Abschnitt Längsbündel glatter Muskelfasern, die eigentlich zur Tunica vaginal. comm. des Samenstranges gehören und als M. cremaster internus bekannt sind.
Der Endteil des Samenleiters schwillt zur Ampulla an, deren Muskulatur unregelmäßiger gestaltet ist, indem zwischen der Ringmuskulatur auch schräg- und längsverlaufende Züge vorkommen, während die Längsmuskeln in vereinzelte Streifen sich auflösen und gegen den Ductus ejaculatorius ganz verschwinden. Ebenso verhält es sich bei der Vesicula seminalis. Die Schleimhaut der Ampulle wie die der Vesicula seminalis ist in (primäre) Falten gelegt, die sich wiederholt in sekundäre und tertiäre Falten teilen; von da aus entwickeln sich teils Divertikel, teils verzweigte röhrenförmige, am blinden Ende etwas erweiterte Verlängerungen (Drüsen?), die sich bis tief in die Muskularis erstrecken können und homogene oder feinkörnige Sekretballen enthalten.
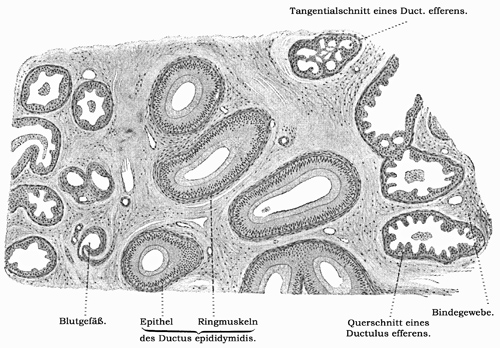
Fig. 304.
Stück eines Durchschnittes durch den Kopf des Nebenhodens eines Hingerichteten. 50mal vergrößert. In der Mitte sieht man Querschnitte des Duct. epidid., rechts und links solche der Duct. efferentes. Technik Nr. 110, S. 289.
Das Epithel ist auf den primären Falten ein geschichtetes (vielleicht nur mehrreihiges), im übrigen einfaches, sezernierendes Zylinderepithel. Die bindegewebige Tunica propria enthält reichlich elastische Fasern, die, wie die im Epithel, in den Bindegewebszellen und in der Muskularis vorkommenden Pigmentkörnchen, von der Pubertät an regelmäßig vorhanden sind.
Die Ductus ejaculatorii sind an ihrer dorsomedialen Seite mit einer Reihe von Anhängen besetzt, die, äußerlich keine Hervorragungen bedingend, ganz in der bindegewebigen Wand der Ductus eingeschlossen sind. Diese Anhänge zeigen zum Teil den gleichen Bau wie die Vesiculae seminales und dürften deshalb als akzessorische Samenblasen bezeichnet werden; zum Teil sind sie nur Konvolute von Drüsen, die mit den Prostatadrüsen verglichen werden können.
Die Schleimhaut der Ductus ejaculatorii verhält sich wie diejenige der Samenblasen, nur sind die Faltungen nicht so kompliziert: eine Muskulatur findet sich nur an den Anhängen, nicht aber in der Wand des Ductus, die nur von kreisförmigen Zügen innen kompakteren („Faserhaut“) und außen lockereren Bindegewebes („Adventitia“) gebildet wird.
Die im Vergleich zu den Blutgefäßen des Hodens spärlichen Blutgefäße des Nebenhodens liegen an den Ductuli efferentes zum Teil dicht unter der Membrana propria und buchten diese zuweilen gegen das Epithel vor. Die Venen des Plexus pampiniformis sind oft mit dicken, Längs- und Ringmuskeln enthaltenden Wandungen versehen.
Die Nerven (zum größten Teil marklos) bilden, außer den Geflechten um die Blutgefäße, in der Muskularis des Nebenhodens, mehr noch aber in derjenigen des Samenleiters und der Samenblasen ein dichtes, in den letztgenannten Teilen auch mit sympathischen Ganglienzellen versehenes Geflecht, den Plexus myospermaticus, von welchem feine Fasern entspringen; dieselben enden zum größeren Teil an glatten Muskelfasern, zum kleineren Teil setzen sie sich in die Schleimhaut fort. Wie bei anderen vegetativen Gebieten besitzt dieses Nervengeflecht Verbindungen mit sympathischen und parasympathischen Nerven.
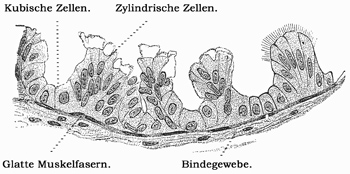
Fig. 305.
Stück eines Querschnittes durch einen Duct. efferens testis des erwachsenen Menschen. Die rechte Ecke der Abbildung ist schematisiert. 360mal vergrößert. Von Flimmerhaaren war hier nichts zu sehen, obwohl die Haare des Epithels des Duct. epididymidis gut erhalten waren. Technik Nr. 110, S. 289.
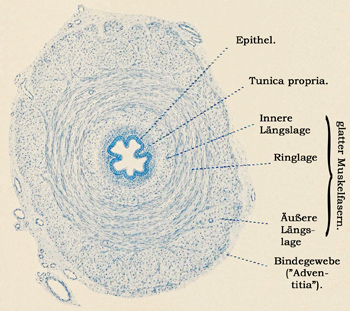
Fig. 306.
Querschnitt des Anfangsteiles des Samenleiters von Menschen. 24mal vergrößert. Technik Nr. 110, S. 289.
Die zwischen den Elementen des Samenstranges gelegene Paradidymis (Giraldès) ist ebenso wie der Ductulus aberrans ein Rest der (embryonalen) Urniere. Beide bestehen aus einem mit kubischem oder zylindrischem Flimmerepithel ausgekleideten Kanälchen, welches von blutgefäßhaltigem Bindegewebe umhüllt wird. Der Appendix testis (Morgagnische Hydatide), ein Rest des oberen Endes des beim Weibe zur Tube werdenden (embryonalen) Müllerschen Ganges, ist ein mit einem kurzen Stiele versehenes, aus gefäßreichem Bindegewebe aufgebautes, solides Läppchen, welches von flimmerndem Zylinderepithel überzogen wird. Der Stiel enthält ein mit Zylinderepithel ausgekleidetes Kanälchen. Der inkonstante Appendix epididymidis, ein Urnierenrest, ist ein mit kubischen Zellen ausgekleidetes, klare Flüssigkeit enthaltendes Bläschen.
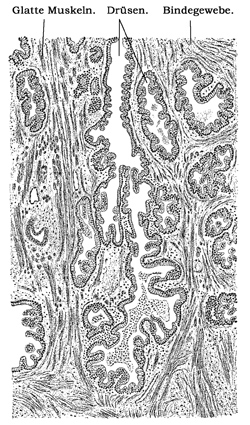
Fig. 307.
Stück eines Schnittes durch die Prostata eines 22jährigen Hingerichteten. 50mal vergrößert. Technik Nr. 110, S. 289.
Anhangsdrüsen der männlichen Geschlechtsorgane.
Die Prostata besteht aus Drüsensubstanz, aus glatten Muskelfasern, die etwa den vierten Teil des Prostatakörpers ausmachen, ferner aus Bindegewebe und vielen elastischen Fasern. Die Drüsensubstanz setzt sich zusammen aus 30-50 verästelten, alveolären, serösen Einzeldrüsen, welche durch ihren lockeren Bau ausgezeichnet sind. Die Drüsen münden mit zwei größeren Ausführungsgängen und einer Anzahl kleinerer in die Harnröhre. Die Drüsenzellen sind bald kubische, bald zylindrische Zellen, welche in einfacher Lage die Röhrchen auskleiden. In den größeren Ausführungsgängen ist „Übergangsepithel“ (S. 385), wie in der Pars prostatica urethrae, vorhanden. In den Endstücken finden sich bei älteren Leuten die sogenannten Prostatasteine, runde, bis 0,7 mm große, geschichtete Sekretklumpen. Die glatten Muskelfasern, welche überall in großer Menge zwischen den Drüsenläppchen gelegen sind, verdicken sich gegen die Harnröhre zu einer stärkeren Ringmuskellage (M. sphincter vesicae internus); auch an der äußeren Oberfläche der Prostata finden sich reichlich glatte Muskelfasern, die an Bündel quergestreifter Muskelfasern (M. sphincter urethrae membranaceae angrenzen. Die Prostata und der Colliculus seminalis sind mit vielen Blut- und Lymphgefäßen versehen; die zahlreichen Nerven bilden weitmaschige, Nervenzellen enthaltende Geflechte, die daraus entspringenden, marklosen Fasern treten teils an die glatten Muskelfasern, teils enden sie in freier Verästlung, teils gehen sie (bei Hund und Katze) in besondere Endapparate (S. 268) über, die sowohl in der Hülle wie im Innern der Prostata gefunden werden.
Die Glandulae bulbourethrales (Cowper) sind zusammengesetzte, tubulo-alveoläre Drüsen; von dem unregelmäßig erweiterten Ausführungsgang gehen ebenso beschaffene Äste aus, an die sich teils direkt, teils durch Vermittlung von Schaltstücken die Endstücke anfügen. Letztere haben teils die Gestalt von Röhrchen, teils von rundlichen Bläschen oder von Übergangsformen beider. Zuweilen finden sich selbst netzförmige Verbindungen der Endstücke. Die Äste des Ausführungsganges sind von einem niedrigen, einschichtigen Epithel ausgekleidet und von dünnen Ringen glatter Muskulatur umgeben. Die Endstücke besitzen den Schleimzellen ähnliche Drüsenzellen und zwischenzellige Sekretkanälchen. Zwischen den Drüsenläppchen liegen viele glatte und quergestreifte Muskelfasern.
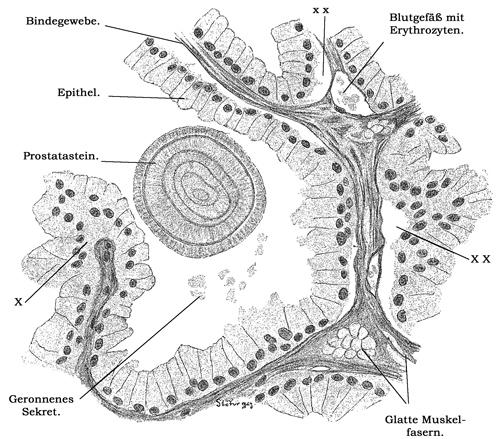
Fig. 308.
Stück eines Schnittes durch eine Prostatadrüse eines 23jährigen Hingerichteten. Bei × ist das Epithel schräg durchschnitten, bei × × hat es sich vom Bindegewebe abgelöst (Kunstprodukt). 360mal vergrößert. Technik Nr. 110, S. 289.
Der Penis.
Der Penis besteht aus drei zylindrischen Schwellkörpern: den beiden Corpora cavernosa penis und dem Corpus cavernosum urethrae, welche von Faszie und Haut eingehüllt werden.
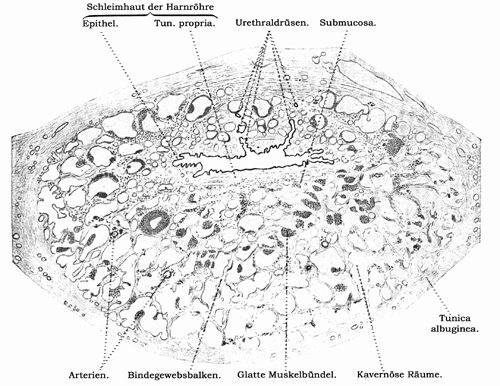
Fig. 309.
Querschnitt der Pars cavernosa urethrae des erwachsenen Menschen. 8mal vergr. Technik Nr. 110, S. 289.
Jedes Corpus cavernosum penis besteht aus einer Tunica albuginea und einem Schwammgewebe. Die Tunica albuginea ist eine feste durchschnittlich 1 mm dicke, bindegewebige, mit vielen, feinen, elastischen Fasern untermischte Haut, an der eine äußere Längslage und eine innere Ringlage zu unterscheiden sind. Das Schwammgewebe wird durch Bündel glatter Muskelfasern und elastische Fasern enthaltende Bindegewebsbalken und -blätter hergestellt, die vielfach miteinander zusammenhängend ein Netzwerk bilden. Die Lücken dieses Netzes sind mit einer einfachen Lage platter Epithelzellen ausgekleidet und mit venösem Blute erfüllt. Die dickwandigen Arterien gehen teils in Kapillaren über, die ein unter der Tunica albuginea gelegenes Netz, das oberflächliche (feine) Rindennetz, bilden; dieses hängt mit einem mehrschichtigen Netze weiterer, venöser Gefäße, dem tiefen (groben) Rindennetze zusammen, welches, in den oberflächlichen Schichten des Schwammgewebes gelegen, in dessen venöse Räume übergeht. Ein Teil der Arterien mündet direkt in das tiefe Rindennetz. Die sogenannten Rankenarterien (A. helicinae) sind in dünnen Bindegewebssträngen gelagerte Ästchen, welche bei kollabiertem Gliede schlingenförmig umgebogen sind und bei unvollkommener Injektion blind zu endigen scheinen. Die das Blut aus den Corpora cavernosa penis zurückführenden Venen (Venae emissariae) entstehen teils aus dem groben Rindennetze, teils aus der Tiefe des Schwammgewebes. Sie münden, nachdem sie die Tunica albuginea durchbohrt haben, in die Vena dorsalis penis.
Das Corpus cavernosum urethrae besteht aus zwei differenten Abschnitten; die zentrale Partie wird durch ein Netz der ansehnlich entwickelten Venen der Submucosa der Harnröhrenschleimhaut (S. 388) gebildet; die peripherische Partie gleicht im Baue dem Corpus cavernosum penis, nur fehlt hier eine direkte Kommunikation der Arterien mit den Venenräumen. Die Tunica albuginea wird nur durch eine Ringfaserlage gebildet. Die Glans penis besteht aus vielfach gewundenen Venen, die durch ein sehr ansehnlich entwickeltes, viele elastische Fasern enthaltendes Bindegewebe, den Träger der feinen Arterien sowie der Kapillaren, zusammengehalten werden. (Über die äußere Haut der Glans s. Kap. Drüsen der Haut.)
In der Tunica albuginea der kavernösen Körper, in der Glans und auch im Präputium finden sich besondere Nerven-Endapparate (S. 268).
B. Die weiblichen Geschlechtsorgane.
Die Eierstöcke.
Die weibliche Keimdrüse macht anfangs eine analoge Entwicklung durch wie der Hoden; auch hier senkt sich das Keimzellen bildende Material aus dem Peritonealepithel (Keimepithel) in ein bindegewebiges Polster ein; unabhängig davon bildet sich ebenfalls ein Rete ovarii aus, das aber zumeist frühzeitig rückgebildet wird.
Die keimbereitenden Anteile des Ovariums sind in ein Bindegewebe (Stroma ovarii) eingeschlossen, das in verschiedenen Schichten angeordnet ist; zu äußerst liegt 1. die Tunica albuginea (Fig. 310), eine beim Menschen dicke, aus zwei oder mehr, in sich kreuzenden Richtungen verlaufenden Bindegewebslamellen und aus vielen platten Bindegewebszellen zusammengesetzte Bildung, die sehr arm an elastischen Fasern ist und ganz allmählich in 2. die Rindensubstanz übergeht; diese enthält die keimbereitenden Anteile und hängt 3. mit der Marksubstanz zusammen, in der sich viele elastische Fasern und zahlreiche, geschlängelte, von Zügen glatter Muskelfasern begleitete Gefäße finden.
In der Marksubstanz liegen gelegentlich solide Epithelstränge („Markstränge“) oder mit kubischem (oft flimmerndem) Epithel ausgekleidete Hohlräume, die als Reste der Anlage eines Rete ovarii (s. oben) aufzufassen sind. Sie scheinen beim Menschen inkonstant zu sein. Ob sie eine funktionelle Bedeutung haben, ist unbekannt.
Wichtige Teile des Bindegewebes können erst im Zusammenhang mit der Eizellenbildung verstanden werden. Die Oberfläche des Ovariums ist von einem Teil des Peritonealepithels überkleidet, das nach Abschluß der Bildung von Ureiern nur noch kubische bis platte Zellen enthält. Bis ganz kurze Zeit nach der Geburt ist dieses Epithel ein Keimepithel, da das zur Keimzellenbildung notwendige Zellenmaterial in ihm entsteht (Fig. 311).
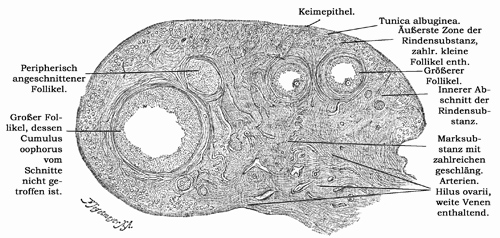
Fig. 310.
Querschnitt des Ovariums eines 8 Jahre alten Mädchens. 10mal vergrößert. Tunica albuginea noch schwach entwickelt. Technik Nr. 163, S. 426.
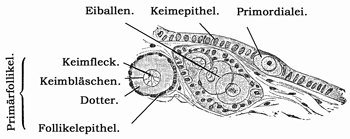
Fig. 311.
Aus einem senkrechten Durchschnitte des Eierstockes eines vier Wochen alten Mädchens. 240mal vergr. Das Primordialei hat einen großen Kern mit Kernkörperchen. Der Eiballen enthält drei Eier, umgeben von Zylinderzellen. Technik Nr. 163, S. 426.
Während der Fetalperiode teilen sich viele Keimepithelzellen in zwei übereinanderliegende Zellen, von denen die untere sich vergrößernd zum Primordialei mit großem Kern und Kernkörperchen wird, während die obere Zelle, sowie die Nachbarzellen abgeflacht werden und sich schalenförmig um das Ei herumlegen. Das Ei, welches sich unter Umständen noch einmal teilt, rückt nun, umgeben von seinen indifferenten Nachbarzellen, in das Ovarialstroma hinab, während oben im Keimepithel auf die gleiche Weise neue Primordialeier entstehen, die ebenfalls in die Tiefe rücken. Solange die Keimzellen sich noch teilen, bezeichnen wir sie als Oogonien. So entstehen ganze Komplexe von Eizellen und indifferenten Zellen des Keimepithels, Komplexe, welche Eiballen (Eischläuche, Einester) heißen. Jedes Ei wird weiterhin durch die sich stark vermehrenden indifferenten Epithelzellen, sowie durch wucherndes Bindegewebe von dem Nachbarei getrennt und stellt nun einen isolierten, kugligen Körper, den Primärfollikel dar, der somit aus dem Ei und den dieses einschließenden Epithelzellen, dem sogenannten Follikelepithel, sowie aus einer bindegewebigen Hülle besteht. Soweit sind es vorzugsweise fetale Vorgänge.
In vereinzelten Fällen findet man auch bei geschlechtsreifen Personen noch Eiballen und Eizellen mit mehreren Keimbläschen; letztere sind nicht etwa durch amitotische oder postfetale mitotische Kernteilung entstanden, sondern stellen entweder Elemente dar, bei denen die Teilung des Zellkörpers bis dahin unterblieben ist oder die (weniger wahrscheinlich) dadurch zustande gekommen sind, daß zwei getrennte Eizellen durch Druck derart zusammengepreßt wurden, daß ihre Trennungslinie verschwand. Solche Bildungen werden ebenso wie die mehrere Eier enthaltenden Follikel als „atypische Follikel“ bezeichnet. Zu ihnen gehören auch die sogenannten „Eiballenfollikel“, in denen ein Ei, als Hauptei, sich weiter entwickelt, während die anderen „Nebeneier“ zugrunde gehend vielleicht bei der Entwicklung des Liquor folliculi (S. 408) beteiligt sind.
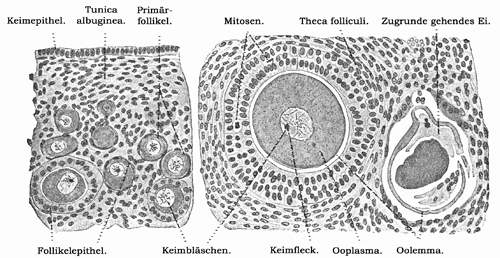
Fig. 312.
Aus Durchschnitten durch die Rinde eines Kanincheneierstockes. 240mal vergrößert. Technik Nr. 163, S. 426.
Nun werden die Follikelepithelzellen erst höher (Fig. 372, links unten), dann mehrschichtig, das Ei wird größer, gewinnt eine exzentrische Lage und erhält eine allmählich sich verdickende, oft fein radiär gestreifte Randschicht, die Zona pellucida (Oolemma), die entweder ein Bildungsprodukt des Follikelepithels oder der Eizelle ist. Während dieses Stadiums des Wachstums, das sich ähnlich den Vorgängen bei der Spermiogenese an das Stadium der Vermehrung anschließt, wird die Oogonie zur Oozyte umgebildet. Die Vergrößerung beruht vorzugsweise auf der Einlagerung der (paraplastischen) Stoffe, die zur Ermöglichung der ersten Bildungsvorgänge im befruchteten Ei notwendig sind (s. S. 57). Während dieser Zeit gehen auch im Kern, den man bei der Oozyte als Keimbläschen bezeichnet, komplizierte Umlagerungen vor sich.
Über den Bau der Eizelle s. S. 56.
Über die sogenannten Reifungsvorgänge, die die Oozyte zum Reifei umwandeln s. die Lehrbücher der Entwicklungsgeschichte.
Nun wächst der Follikel weiter; unter fortwährender Vermehrung der Follikelepithelzellen — man sieht viele Mitosen solcher — entstehen zwischen ihnen Lücken, die von einer wässerigen Flüssigkeit, dem Liquor folliculi, ausgefüllt werden. Der Liquor ist hauptsächlich ein Transsudat aus den den Follikel umspinnenden Blutgefäßen; er erfährt eine immer fortschreitende Vermehrung, so daß der Follikel bald ein mit Flüssigkeit erfülltes Bläschen, den Folliculus vesiculosus (Graaf), dessen Durchmesser 0,5-12 mm beträgt, darstellt. Um größere Follikel ordnet sich das Bindegewebe des Stroma zu kreisförmigen Zügen, die wir Theca folliculi (Fig. 392) nennen. Der Bläschenfollikel besteht somit 1. aus einer bindegewebigen Hülle, der Theca folliculi, welche zwei Schichten, a) eine faserige Tunica externa und b) eine an Zellen und Blutgefäßen reiche Tunica interna (Fig. 313) unterscheiden läßt; an diese Schicht grenzt beim Menschen eine zarte, aus feinsten Fasern verschmolzene sogenannte Glashaut an; 2. aus dem mehrschichtigen Follikelepithel, das sich beim Zerzupfen frischer Follikel in großen Fetzen darstellen läßt und seit langer Zeit als Stratum (Membrana) granulosum bekannt ist. Eine verdickte Stelle des Follikelepithels, der Cumulus oophorus, schließt das Ei ein; die der Zona pellucida zunächst liegenden Epithelzellen sind radiär zum Ei gestellt, bilden die Corona radiata und bleiben beim Austritt der Oozyte aus dem Follikel (s. u.) gewöhnlich mit dieser in Verbindung. Der größte Teil des Binnenraums des Follikels wird vom Liquor folliculi eingenommen.
Hat der Bläschenfollikel seine völlige Reife erreicht, so platzt er an der der Eierstocksoberfläche zugekehrten Seite, die schon vorher durch Vorwölbung und starke Verdünnung kenntlich war; das Ei gelangt in die Beckenhöhle, der leere Follikel bildet sich zum gelben Körper (Corpus luteum) zurück. Erfolgt keine Befruchtung des ausgestoßenen Eies, so verschwindet das Corpus luteum gewöhnlich nach wenigen Wochen; tritt dagegen Schwangerschaft ein, so entwickelt sich der geborstene Follikel zu einem größeren Körper, der einen Durchmesser bis zu 3 cm besitzt und sich durch die Zeit der Schwangerschaftsdauer erhält (s. u. S. 416).
Nicht alle Oozyten entwickeln sich so weit; die übergroße Mehrzahl derselben geht auf jüngeren oder älteren Entwicklungsstufen zugrunde. Von den mehr als 40000 jungen Oozyten im Ovarium neugeborener Mädchen werden im Laufe des Lebens etwa 400 zu entwicklungsfähigen Eizellen ausgebildet. Zugrundegehende Oozyten und Follikel gehören deshalb zu dem normalen Bilde des Ovariums (Fig. 312 rechts). Enthält ein größerer Follikel eine absterbende Oozyte, so wuchern Zellen der Theca folliculi und durchsetzen den Follikel, so daß derselbe bald in eine bindegewebige Narbe umgewandelt wird (sogenannte atretische[110] Follikel). Die normalerweise während des Follikelwachstums Fette enthaltenden Zellen der Tunica interna der Theka vermehren ihren Fettgehalt (was wohl als Aufspeicherung und Umsetzung von Stoffen aufzufassen ist, die bei den Auflösungsprozessen im Follikelinnern frei werden).
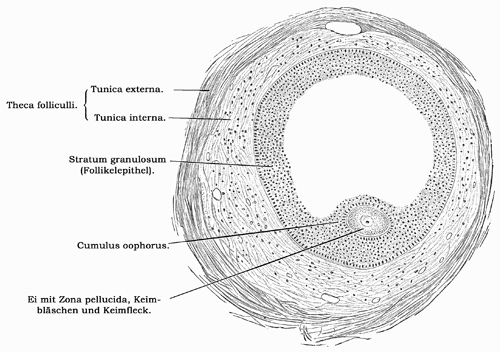
Fig. 313.
Durchschnitt eines Bläschenfollikels eines 8jährigen Mädchens. 90mal vergrößert. Der helle Raum in der Mitte enthielt den Liquor folliculi. Technik Nr. 163, S. 426.
Die Summe dessen, was man als „interstitielle“ (Pubertäts-) Drüse des Ovariums bezeichnet, dürfte zum größten Teil aus solchen im Gefolge der Follikelatresie entstandenen Thekazellen bestehen. Ob die bei manchen Tieren (besonders Kaninchen) aufgefundenen großen Zellmassen des Ovariums hiermit identisch sind, bedarf noch der endgültigen Klärung. Nach dem heutigen Stande unserer Kenntnis liegt kein Grund vor, die innersekretorischen Einflüsse, die das Ovarium analog dem Hoden sicher ausübt, auf das „Zwischengewebe“ zu beziehen. Wir glauben eher, daß auch hier Anteile des generativen Systems innersekretorisch wirksam sind.
Die Arterien des Eierstocks, Äste der A. spermatica intern. und der A. uterina, treten am Hilus ein, teilen sich in der Marksubstanz und sind durch ihren geschlängelten Verlauf charakterisiert (Fig. 310). Von da ziehen sie in die Rindensubstanz, wo sie vorzugsweise das in der Tunica interna der Follikel reichliche Kapillarnetz speisen. Die Venen bilden am Hilus ovarii einen dichten Plexus. Die im menschlichen Ovarium nur mit einer einfachen Epithelwand versehenen Lymphgefäße verlaufen unabhängig von den Blutgefäßen; sie bilden keine adventitiellen Lymphräume (S. 179). In der Marksubstanz sind sie reichlicher vorhanden als in der Rindensubstanz, in welcher sie in der Tunica externa der größeren Follikel und der Corpora lutea sich ausbreiten. Die Albuginea besitzt keine Lymphgefäße. Marklose und markhaltige Nerven treten in großer Zahl mit den Blutgefäßen vom Hilus aus in die Marksubstanz, woselbst sie größtenteils in der Wand der Blutgefäße enden. Ein kleiner Teil geht bis zur Rindensubstanz; dieser bildet dort ein dichtes Geflecht feiner, meist markloser Fasern, welches die Follikel umspinnt und feine Ästchen zur Wand der Blutgefäße entsendet. Ein sympathisches Ganglion existiert im menschlichen Eierstock nicht, sympathische Nervenzellen liegen aber in großer Zahl im Plexus ovaricus.
Das Epoophoron und das Paroophoron sind Reste embryonaler Bildungen. Ersteres, im lateralen Abschnitte der Mesosalpinx am (bei Katze, Maus u. a., in seltenen Fällen auch beim Menschen im) Hilus ovarii gelegen, ist eine Gruppe blind endigender geschlängelter Kanälchen, deren Wand aus zuweilen flimmernden Zylinderepithelzellen und aus kreisförmig angeordneten Fasern besteht; auch solide Stränge gehören vielleicht hierher. Das Epoophoron ist ein Rest des Sexualteiles der Urniere. Das Paroophoron liegt im medialen Abschnitte der Mesosalpinx und besteht aus verästelten, mit Zylinderzellen ausgekleideten Kanälchen; es ist ebenfalls ein Rest der Urniere.
Tube, Uterus, Vagina.
Diese Hohlorgane, die die aus dem Ovarium austretenden Oozyten aufnehmen und weiterleiten, sind embryonal aus den Müllerschen Gängen entstanden, deren paariger Abschnitt zur Tuba uterina (Fallopia) wird, während der unpaare Abschnitt sich zu Uterus und Vagina ausbildet.
Wie bei anderen Hohlorganen finden wir hier innen 1. die Schleimhaut, 2. eine in den verschiedenen Abschnitten sehr verschiedene Muskelhaut und 3., soweit eine peritoneale Angrenzungsfläche vorhanden ist, eine Serosa. Tube und Uterus besitzen in mancher Beziehung (Epithel) Ähnlichkeiten, der Uterus ist aber darüber hinaus dazu eingerichtet, die Entwicklung des Eies zu ermöglichen. Die Vagina, der äußeren Oberfläche am meisten genähert, stellt eine Anpassung an den Begattungsakt dar und weicht im Bau von den beiden oberen Abschnitten stark ab.
Die Schleimhaut der Tube ist in zahlreiche Längsfalten gelegt; am höchsten sind die Falten in der Eileiterampulle, woselbst sie auch durch schräge, kleine Falten untereinander verbunden sind. Die Schleimhaut ist, ebenso wie im Uterus von einem einschichtigen, zylindrisch bis kubischen Epithel überzogen, das flimmernde und nichtflimmernde Zellen enthält. Die letzteren liefern ein schleimartiges Sekret. Der Flimmerstrom ist gegen das Uteruslumen gerichtet und ist wohl als Schutz gegen ein Eindringen der lebhaft beweglichen Spermien in die Schleimhaut zu betrachten. Die zellreiche, von einem Faserfilz durchsetzte Tunica propria schließt sich eng an die Muskularis an.
Die Muskelhaut besteht aus einer inneren, dickeren Lage zirkulärer und einer äußeren, stellenweise dünnen Lage longitudinaler glatter Muskelfasern, zwischen denen fibrilläres Bindegewebe oft in großen Mengen gelagert ist. Der seröse Überzug wird durch das Bauchfell gebildet, unter dem sich eine ansehnliche Lage lockeren Bindegewebes befindet. Elastische Fasern finden sich in der Muskelhaut und in der Serosa, sind aber bei Kindern und bei alten Frauen mehr auf die Serosa beschränkt. Die zwischen Ring- und Längsmuskulatur reich entwickelten Blutgefäße senden bzw. empfangen Äste aus der Schleimhaut, die mit einem engmaschigen Kapillarnetz versehen ist. Die größeren Venen verlaufen längs der Schleimhautfalten. Die Kenntnis des genaueren Verhaltens der Lymphgefäße fehlt noch. Die Nerven bilden (beim Schwein) in der Schleimhaut ein reiches Geflecht, von dem Äste zum Epithel aufsteigen. Ein Eindringen in das Epithel ist nicht beobachtet worden.
Am Uterus müssen zwei Abschnitte nach ihrem Aufbau unterschieden werden: 1. das Corpus und 2. die Cervix. Der Übergangsteil zwischen beiden, Isthmus, schließt sich in seiner Zusammensetzung eng an das Corpus uteri an. Vor der Tube zeichnet sich der Uterus durch das Fehlen der Schleimhautfaltung, durch kryptenartige Epitheleinsenkungen und vor allem durch die starke Muskelwand aus.
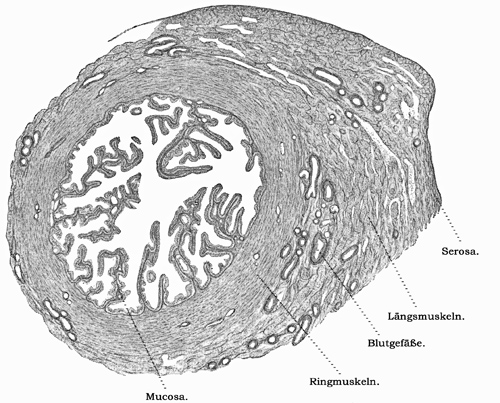
Fig. 314.
Querschnitt des Eileiters einer erwachsenen Frau (nahe der Ampulle). 30mal vergrößert. Technik Nr. 110, S. 289.
Im Corpus uteri finden wir die fast unverschieblich (eine Submukosa fehlt) der Wandung aufsitzende Schleimhaut (Endometrium)[111], die sehr stark entwickelte Muskularis (Myometrium) und eine äußere Bindegewebslage (Perimetrium), die an den der Bauchhöhle zugewandten Flächen von Serosaepithel überkleidet ist.
Die Schleimhaut ist beim geschlechtsreifen Weibe zyklischen Veränderungen unterworfen, die mit der Ovulation (s. unten S. 413) in engem Zusammenhange stehen. Kurz vor der Geschlechtsreife und in der Mitte zwischen zwei Menstruationen beträgt ihre Höhe etwa 2 mm. Die Oberfläche ist glatt und von einem Epithel überzogen, das demjenigen der Tube sehr ähnlich ist. Von ihm senken sich in die Tunica propria, nicht sehr dicht stehend (Fig. 317, 10. Tag), leicht schraubenförmig verlaufend, „Drüsenschläuche“ ein, die mit dem gleichen Epithel ausgekleidet sind wie die Oberfläche des Uterus. In der tiefsten Schleimhautschicht (s. unten) teilen sich die Drüsen oft gabelig.
Das Schleimhautbindegewebe ist eine Art retikuläres Bindegewebe, dessen Maschen von zahlreichen freien Zellen eingenommen werden können. Die Form der Bindegewebszellen ist in dem hier zunächst geschilderten Ruhezustand spindelig. An freien Zellen finden sich meist reichlich Lymphe- und Leukozyten.
Die Muskularis besteht aus einem feinen Bindegewebsfasergerüst und aus glatten Muskelfasern, welche, zu Bündeln vereint, in den verschiedensten Richtungen sich durchflechten, so daß eine scharfe Abgrenzung einzelner Lagen nicht möglich ist.
Man kann im allgemeinen drei Schichten unterscheiden: 1. eine innere, Stratum submucosum, aus längs verlaufenden Bündeln zusammengesetzte, 2. eine mittlere, die mächtigste, die vorwiegend aus zirkulären Muskelbündeln besteht und weite Venen enthält (daher „Stratum vasculare“), und 3. eine äußere, teils von zirkulär-, teils, von längsverlaufenden Bündeln (letztere dicht unter der Serosa) gebildet: „Stratum supravasculare“ (Fig. 315). Die Längsbündel dieses Stratum gehen teils in die Muskelhaut der Tuben, teils in das benachbarte, subseröse Bindegewebe der Bauchfellfalten über.
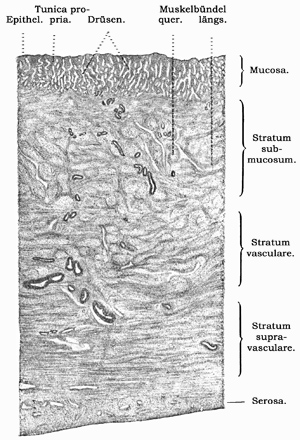
Fig. 315.
Stück eines Querschnittes durch die Mitte des Uterus eines 18jährigen Mädchens. 6mal vergrößert. Technik Nr. 164, S. 426.
Die Serosa zeigt keine besonderen Eigentümlichkeiten.
In der Cervix uteri ist die Schleimhaut dicker und trägt in den oberen zwei Dritteln ein Zylinderepithel, in dem Schleimzellen überwiegen, während gegen das Orificium uteri extern., besonders im Anschluß an mehrere Schwangerschaften, Papillen mit geschichtetem Plattenepithel auftreten. Außer vereinzelten tubulösen Drüsen kommen noch 1 mm weite, mit vielen Ausbuchtungen versehene Schleimdrüsen, sogenannte Schleimbälge, vor, die durch Retention ihres Sekretes sich zu Zysten, den Ovula Nabothi, umgestalten können.
Die Muskularis zeigt eine deutlich ausgesprochene Schichtung in eine innere und äußere longitudinale und eine mittlere zirkuläre Muskellage. Während der Uterus sonst wenig und nur in seinen peripherischen Schichten senkrecht zur Kontraktionsrichtung der glatten Muskelfasern verlaufende elastische Fasern enthält, finden sich solche reichlich in den gleichen Partien des unteren Segmentes des Uteruskörpers und der Portio vaginalis.
In der ersten Hälfte der Schwangerschaft erfolgt eine qualitative und quantitative Zunahme der elastischen wie der muskulösen Fasern, in der zweiten Hälfte nehmen die elastischen Elemente ab, während gleichzeitig im Gewebe des Perimetrium eine Vermehrung dieser stattfindet.
In der Muskularis des Uterus und auch des oberen Scheidenabschnittes findet man bei Neugeborenen und Kindern in verschiedener Ausdehnung erhaltene Reste des Urnierenganges, eines Rohres, dessen Wand aus einem einfachen Zylinderepithel und aus meist längsverlaufenden, glatten Muskelfaserzügen gebildet wird. Das Ligamentum uteri rotundum enthält außer glatten Muskeln in seiner Achse auch Bündel quergestreifter Muskelfasern.
Die Blutgefäße lösen sich in der Muskularis in Äste auf, die besonders im Stratum vasculare stark entwickelt sind. Die arteriellen Endäste treten in gewundenem Verlaufe zur Schleimhaut, wo sie ein die Drüsen umspinnendes Kapillarnetz bilden, das sich in ein dichtes, unter der Oberfläche gelegenes Kapillarnetz fortsetzt. Die Lymphgefäße bilden in der Schleimhaut ein weitmaschiges, mit blinden Ausläufern versehenes Netzwerk. Von diesem treten durch die Muskularis Stämmchen, welche mit einem dichten, subserösen Netze größerer Lymphgefäße zusammenhängen. Die sehr zahlreichen, teils markhaltigen, teils marklosen Nerven stammen aus einem mit dem Plexus hypogastricus verbundenen Nerven- und Gangliengeflecht, das sich an der äußeren Oberfläche des Uterus ausbreitet, und verästeln sich — nachdem die markhaltigen ihre Markscheide verloren haben — zum größten Teil in der Muskularis, in der sie wie in den Muskelhäuten des Darmes (S. 339) enden. In der Schleimhaut bilden die Nerven ein dichtes Geflecht, von welchem Äste bis unter das Epithel aufsteigen, ja teilweise sogar in das Epithel eindringen.
Ganglienzellen fehlen in der Uteruswand.
Zur Zeit der Menstruation und in der Schwangerschaft erfährt die Uterusschleimhaut eine Reihe von Veränderungen, die eine eingehendere Schilderung beanspruchen.
Ovulation, Menstruation und Schwangerschaft.
Die beim geschlechtsreifen Weibe in der Regel in Abständen von 4 Wochen auftretende Genitalblutung entstammt dem Uterus; bis zu ihrem Eintritt findet hier eine hochgradige Umwandlung der oberen Schleimhautschichten statt, die sich nach Ablauf der Menstruation wieder ausgleicht. Diese zyklischen Veränderungen rechtfertigen es, eine „funktionelle Schicht“ von der Basalschicht zu unterscheiden (Fig. 317); die letztere bleibt während des ganzen Menstruationszyklus relativ unverändert, während die funktionelle Schicht unmittelbar nach der Menstruation (Fig. 317, 2. Tag) fast vollständig fehlt, in der postmenstruellen Zeit (ca. 4.-11. Tag) sich langsam zur Normalhöhe regeneriert und in der prämenstruellen Zeit (ca. 15.-28. Tag) sich außerordentlich verdickt.
Nach neueren Untersuchungen wird bei jeder Menstruation die funktionelle Schicht vollständig abgestoßen und von der Basalschicht aus regeneriert. Früher und auch heute glauben aber noch viele Autoren, daß die Substanzverluste in der Schleimhaut nicht so tiefgreifend sind, daß die funktionelle Schichte vielmehr durch Abschwellen in das Normalstadium zurückkehren kann.
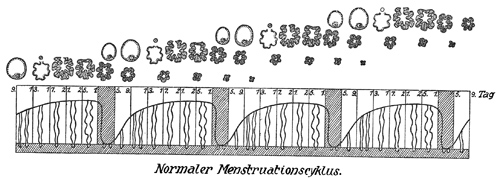
Fig. 316.
Schematische Darstellung der Beziehungen zwischen Ovulation und Menstruation (nach Schroeder). Die Wellenlinie gibt die Höhenänderung der Uterusschleimhaut an, die schraffierten Säulen die Blutungszeit. Oben sind die jeweiligen Umwandlungen eines Ovarialfollikels bis zur Rückbildung des Corpus luteum dargestellt.
Die starken, prämenstruellen Veränderungen der funktionellen Schicht betreffen einmal die Drüsen, die sich stark verlängern, und deren Wandung sich unter Abflachung des Epithels vielfach faltet; sie sondern nun vermehrt ein schleimiges Sekret ab. Die obersten, dem Lumen genäherten Teile der Drüsen bleiben mehr gerade; sie sind von reichlichen, ebenfalls veränderten Bindegewebszellen umschlossen. Diese Schicht setzen wir als Zona compacta der tiefen, an Drüsendurchschnitten reichen Zona spongiosa gegenüber. Die vorher schmalen Bindegewebszellen schwellen auf, wobei sie sehr glykogenreich werden, ihr Kern wird kuglig und schwerer färbbar, so daß diese Zellen den bei Schwangerschaft nachweisbaren, sogenannten Deziduazellen (s. S. 418) sehr ähnlich werden. Die Umwandlung der Bindegewebszellen findet sich vorzugsweise in der Zona compacta, fehlt vollkommen in der Basalschicht.
In dem stark aufgelockerten Bindegewebe der funktionellen Schichte findet sich in der letzten prämenstruellen Zeit außerhalb der Gefäße viel Blut, auch die Zahl der Leuko- und Lymphozyten ist vermehrt.
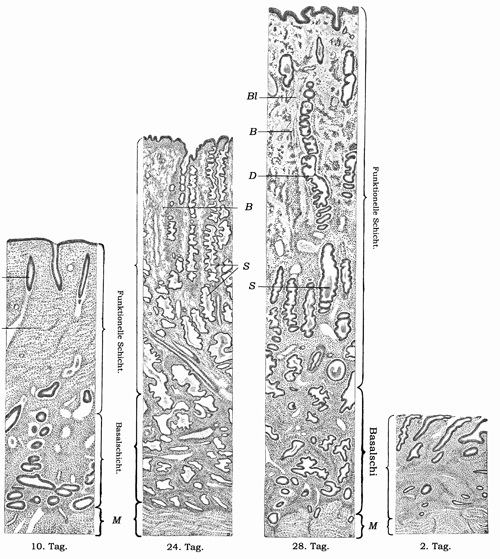
Fig. 317.
Uterusschleimhaut von verschiedenen Tagen des Menstruationszyklus. (Nach Präparaten von Prof. R. Schroeder-Rostock.) 30mal vergrößert. Technik Nr. 164, S. 426. M = Muskularis, B = Bindegewebe, D = Drüsen, Bl = Blutung, S = Sekret in den geschlängelten Drüsen.
Das Einsetzen der prämenstruellen Umwandlung fällt wahrscheinlich mit dem Zeitpunkt einer Ovulation zusammen. Über den Termin dieses Vorganges im Rahmen des Menstruationszyklus gehen die Meinungen noch stark auseinander. Wir haben (mit Schroeder) diesen Termin auf den 14.-16. Tag des Zyklus angesetzt; von anderer Seite werden der 18.-19. Tag, endlich auch frühere Termine (8.-9. Tag) angegeben.
Maßgebend für die wechselnden Angaben sind teils vergleichende Beobachtungen an Ovarien und Uterus, weiter die Erfahrungen über Schwangerschaftsdauer, endlich die nicht sehr zahlreichen Fälle junger, menschlicher Entwicklungsstadien, deren Alter uns bezüglich Menstruations- und Befruchtungstermin bekannt ist.
Nach der Ovulation bildet sich der Follikel in ein Corpus luteum menstruationis um (falls eine Befruchtung des Eies ausbleibt). Bis zum Beginne der Menstruation besteht dieses aus einer gefalteten Wandung, die einen zentralen, mit Liquorresten gefüllten, Hohlraum umgibt. Zwischen die der Wand ansitzenden Follikelzellen wuchern Zellen und Gefäßsprossen aus der Theca follicula ein, in denen ebenso wie in den Follikelzellen in zunehmendem Maße Lipoidstoffe abgelagert werden (deren Summe die Gelbfärbung der Wand hervorruft); die Zellen werden so zu Luteinzellen. Diese Entwicklung wird aber bald durch Blutungen unterbrochen, die nach neueren Forschungen zur Zeit der Menstruation — unter dem Einfluß des erhöhten allgemeinen Blutdruckes — die Rückbildung des Corpus luteum einleiten. Nunmehr tritt unter Zersetzung des Blutes eine zunehmende Pigmentierung, weiterhin narbiges Bindegewebe auf, bis schließlich nach 6-8 Wochen die Überreste fast völlig verschwunden sind.
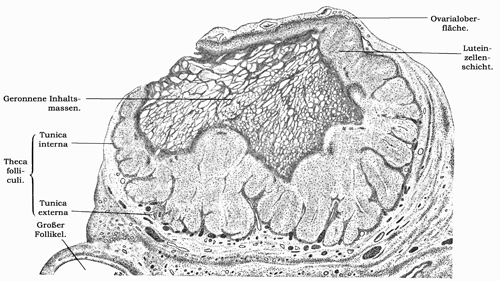
Fig. 318.
Corpus luteum graviditatis (Mensch). Ca. 7mal vergrößert. Technik Nr. 110, S. 289.
Tritt Schwangerschaft ein, so bleibt das Corpus luteum bis zum Ende derselben erhalten (Corpus luteum verum s. graviditatis), weil keine Blutungen seine Entwicklung stören; auch bildet es sich bei dauernd zunehmender Lipoidablagerung und Wandverdickung zu einem mächtigen Körper aus (Fig. 318), dem von vielen Autoren ein bestimmender innersekretorischer Einfluß auf die ersten Entwicklungsbedingungen des befruchteten Eies einerseits, auf den Gesamthabitus des mütterlichen Organismus andererseits zugeschrieben wird. Von anderer Seite wird diese Aufgabe des Corpus luteum allerdings bestritten.
Die einzelnen Zellen des Corpus luteum sind zu Strängen durch gefäßhaltiges Bindegewebe angeordnet und sehr lipoidreich (Fig. 319).
Die zyklischen Umwandlungen der Uterusschleimhaut werden verständlich, wenn ihre Bedeutung für eine etwa beginnende Schwangerschaft berücksichtigt wird.
Das menschliche Ei wird wahrscheinlich kurz nach seinem Austritt aus dem Follikel in den Anfangsabschnitten der Tuben befruchtet und macht seine ersten Entwicklungsstadien, von denen wir keine Kenntnis haben, auf dem Wege nach dem Uterus durch; die Dauer dieser Wanderung wird gewöhnlich auf 8-10 Tage berechnet.
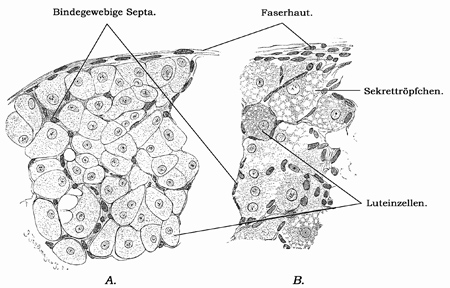
Fig. 319.
A Stück eines Corpus luteum des Kaninchens. B Stück eines Corpus luteum der Katze. 260mal vergr. In B enthalten die Luteinzellen kleinere und größere Sekrettröpfchen. Technik Nr. 163, S. 426.
Schließt sich, wie oben dargestellt, die prämenstruelle Veränderung an die Ovulation an, so würde der Keim bei seinem Eintreffen in der Uterushöhle die durchsaftete, aufgelockerte Schleimhaut antreffen, die nun den Mutterboden für seine Entwicklung abgibt.
Alle bekannten menschlichen Keime liegen von der Schleimhaut rings verschlossen („implantiert“) in der Wand des Uterus. Bei dem Eindringen und Wachsen der Keimblase wird sehr viel mütterliches Gewebe zerstört, wobei ein nur zum Zwecke der kindlichen Ernährung ausgebildetes Organ, das Chorion[112] mit seinem Überzug von Trophoblast[113] die wichtigste Rolle spielt (über seine Entstehung s. die Lehrbücher der Entwicklungsgeschichte).
Die Uterusschleimhaut besitzt im Beginne der Schwangerschaft alle wesentlichen Merkmale der prämenstruellen Phase, nur in verstärktem Maße; wir bezeichnen die Schleimhaut dann als Dezidua[114], weil sie am Schlusse der Schwangerschaft mit ausgestoßen wird; das betrifft aber ebenso nur die funktionelle Schicht (s. oben) wie bei der Menstruation. Sie zeichnet sich durch die außerordentlich starke Sekretion der geschlängelten Drüsen, durch die Umwandlung der Bindegewebszellen zu aufgeschwollenen, glykogenreichen, polygonalen Formen (Deziduazellen) und durch die Sonderung der funktionellen Schicht in eine sehr deziduazellenreiche Zona compacta und eine die Drüsenkörper enthaltende Zona spongiosa aus. Die Basalschichte, die den Grund der Drüsen enthält, bleibt ziemlich unverändert und dient nach Beendigung der Schwangerschaft zur Regeneration der Schleimhaut.
Da sich die anfangs sehr kleine Keimblase nur an einer kleinen Stelle der Uteruswand in die Schleimhaut einsenkt, verhält sich die Dezidua im ersten Beginne in der ganzen Uterushöhle ziemlich gleichartig. Mit dem Wachsen der Keimblase gewinnt die Deziduastelle, an der die Keimblase sitzt, eine erhöhte Bedeutung; an ihrem basalen Teil (Dec. basalis) bildet sich das Ernährungsorgan, die Plazenta, aus, während der übrige, die Keimblase umschließende Deziduateil (Dec. capsularis) mit der Vergrößerung der Keimblase allmählich verkümmert und in der zweiten Hälfte der Schwangerschaft als selbständige Schicht nicht mehr nachweisbar ist. Sie ist dann mit der anfangs nicht unmittelbar mit der Keimblase verbundenen, übrigen Dezidua (Dec. vera) verschmolzen. Die letztere vermindert ihre Dicke gegen das Ende der Schwangerschaft ebenfalls erheblich, während die Dec. basalis im Verein mit dem an dieser Stelle sehr stark entfalteten (fetalen) Chorion bis zum Schluß der Schwangerschaft als Plazenta eine wichtige Rolle für die Ernährung des Embryo spielt.
Plazenta.
Der komplizierte Bau der menschlichen Plazenta wird nur verständlich durch das Studium ihrer Entwicklung. Der Prozeß ist folgender: das auf der Oberfläche der Uterusschleimhaut angelangte Ei nistet sich in die prämenstruell (s. oben) veränderte Schleimhaut ein und wird alsbald von deren Bindegewebe rings umschlossen. Das vom fetalen Ektoderm abstammende Epithel des Chorion verdickt sich unterdessen ansehnlich und bildet den Trophoblast. Dieser zerstört die umliegenden Teile der Dezidua; mit der weiteren Ausdehnung der Keimblase wird die Trophoblastschicht allmählich zweischichtig, indem die den Zerfallsräumen des mütterlichen Gewebes zugewandten Trophoblastmassen in ein schließlich den Trophoblast allseitig bedeckendes Synzytium umgewandelt werden (die Zellgrenzen schwinden, das Zytoplasma wird schollig und nimmt oft mütterliche Zerfallsreste auf, auch bildet sich ein dem mütterlichen Gewebe zugewandter sogenannter Bürstensaum aus). Die vom Synzytium bedeckte „Grundschicht“ wird auch Langhanssche Zellschicht (Zytotrophoblast) genannt.
Die zerstörende, auflösende Wirkung des Trophoblastes geht von der zuerst vorhandenen Grundschicht aus, die auch nur so lange nachweisbar ist (bis zum Ende des 4. Schwangerschaftsmonats), als in größerem Umfange mütterliches Gewebe aufgelöst wird. Das Synzytium spielt durch die ganze spätere Schwangerschaftszeit als glattwandige Begrenzung der mütterlichen Bluträume (Schutz gegen Gerinnung!) und wahrscheinlich auch als resorbierende Schicht eine große Rolle.
In den Trophoblast wachsen von fetaler Seite aus bindegewebige, später blutgefäßführende Sprossen ein, wodurch die Zotten (Villi) gebildet werden. Das Bindegewebe grenzt sich durch eine zarte Membrana propria gegen die Grundschicht des Trophoblastes ab (Bau der Zotten s. Fig. 322).
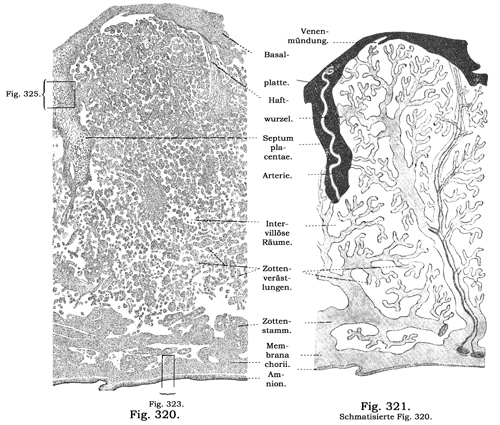
Fig. 320. Fig. 321. Schematisierte Fig. 320.
Stück eines senkrechten Schnittes einer reifen menschlichen Plazenta. 12mal vergrößert. Technik Nr. 165, S. 426.
In die anfänglich nur mit mütterlichen Zerfallsmassen gefüllten sogenannten intervillösen Räume ergießt sich aus den Gefäßen der Decidua basalis Blut, so daß allmählich hier ein geregelter Kreislauf zustande kommt, wobei aber an Stelle der Kapillaren in anderen Kreislaufgebieten die unmittelbar vom Synzytium begrenzten intervillösen Räume treten.
Durch das enorme Wachstum und die vielfältige Verzweigung der Chorionzotten ist der Gesamtaufbau der Plazenta schwer zu übersehen. Wir besprechen am besten die Placenta fetalis und die Placenta uterina, vielfältig räumlich mit einer verbunden, einzeln.
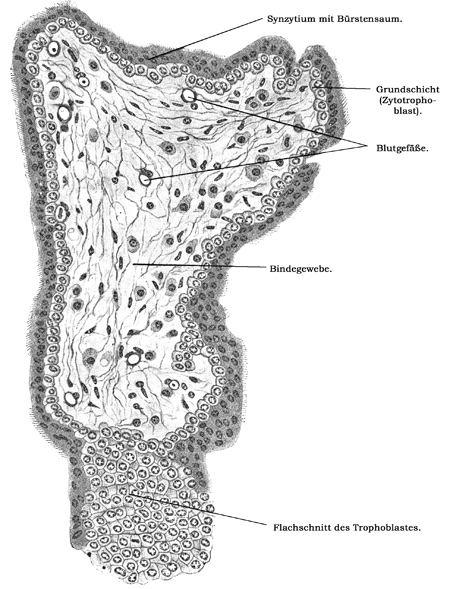
Fig. 322.
Querschnitt durch eine menschliche Chorionzotte aus der 7. Schwangerschaftswoche. 270mal vergr. Technik Nr. 165, S. 426.
Die Placenta fetalis besteht aus einer dicken, bindegewebigen Haut, der Membrana chorii, welche die von der Nabelschnur her eintretenden Verästlungen der Nabelgefäße enthält. Die gegen den Fetus gekehrte Fläche der Membran ist von dem glatten Amnion[115] überzogen, welches gegen Ende der Schwangerschaft aus einer homogenen Bindegewebslage und einem die freie Oberfläche überkleidenden, einschichtigen Zylinderepithel, dessen Elemente Fettropfen und Vakuolen (Sekretionsbilder?) enthalten, besteht (Fig. 323). Die entgegengesetzte, der Placenta uterina zugekehrte Fläche der Membrana chorii ist mit vielen, reich verzweigten Zotten, den Chorionzotten, besetzt, deren Äste zum Teil frei enden („freie Ausläufer“), zum Teil mit der kompakten Schicht und den Septen der Placenta uterina verbunden sind; diese letzteren Äste heißen „Haftwurzeln“ (Fig. 320 und 321).
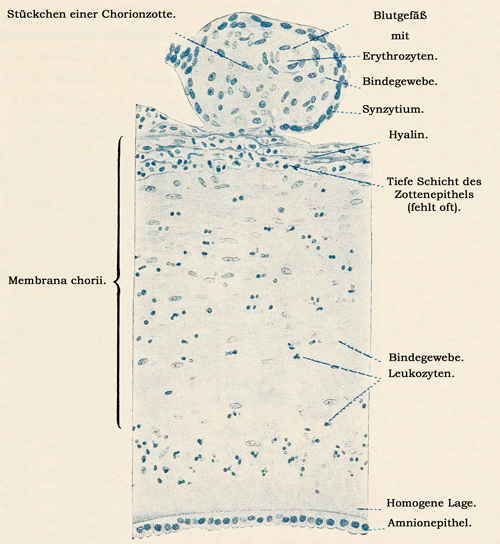
Fig. 323.
Aus einem Querschnitt einer reifen menschlichen Plazenta. 200mal vergr. Technik Nr. 165, S. 426.
Die Chorionzotten bestehen in ihren stärkeren Stämmen aus mehr fibrillärem, in ihren feineren Verzweigungen aus mehr gallertigem Bindegewebe. Ihre freie Oberfläche ist, wie die zwischen den Ursprüngen der Zotten befindliche freie Oberfläche der Membrana chorii, von Epithel überzogen. Dieses Epithel besteht im ersten Schwangerschaftsmonat aus den zwei vom Trophoblasten gebildeten Schichten (S. 418), dem kubischen Epithel und dem Synzytium (Fig. 322).
Vom Synzytium ragen oft lange, keulenförmige, mit vielen Kernen versehene Fortsätze in die intervillösen Räume, Schrägschnitte derselben können von Anfängern mit Riesenzellen verwechselt werden.
In späteren Stadien verändern sich beide Schichten. Die tiefe Schicht verdickt sich auf der Membrana chorii an einzelnen, unregelmäßig zerstreuten Stellen (Fig. 323), auf den Zotten aber wird sie fast überall immer flacher und ist nach dem 4. Monat daselbst nur mehr in Spuren, in den letzten 3 Monaten überhaupt nicht mehr nachzuweisen. An einzelnen Stellen jedoch erhält sich die tiefe Schicht auch auf den Zotten; sie bildet da Verdickungen „Zellknoten“ und (besonders an den Spitzen der Zotten) „Zellsäulen“, welche die Verbindung zwischen Haftwurzeln und der kompakten Schicht vermitteln (vgl. Fig. 325). Die oberflächliche Schicht, das Synzytium, verdickt sich auf den Zotten zu vielen kleinen „Proliferationsinseln“, die sich allmählich vergrößern und zu ansehnlichen Feldern zusammenfließen. Die Zotten der reifen Plazenta sind nur von dem Synzytium überzogen (Fig. 324). Auf der Membrana chorii verschwindet das Synzytium und gleichzeitig tritt auf ihr, auf den Zotten und an der freien, inneren Oberfläche der Decidua basalis wie auch auf den Zellknoten eine hyaline, lichtbrechende, stark färbbare Masse auf, die, oft von Spalten und Lücken durchsetzt, den Namen „kanalisiertes Fibrin“, „Hyalin“, erhalten hat (Fig. 324). Die Herkunft dieser Masse ist noch nicht völlig sicher gestellt.
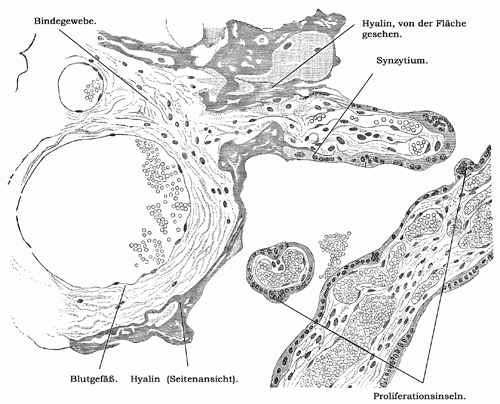
Fig. 324.
Aus einem Durchschnitt durch eine reife menschliche Plazenta. Stücke von Zottendurchschnitten. 260mal vergrößert. Technik Nr. 165, S. 426.
Jede Chorionzotte schließt einen Ast der Nabelarterie ein, aus dessen Verzweigung sehr weite, unregelmäßig kalibrierte Kapillaren hervorgehen, die dicht unter dem Epithel gelegen sind; ein Nabelvenenast führt das Blut wieder zurück. Das Gefäßsystem der Placenta fetalis ist ein völlig geschlossenes, eine direkte Kommunikation zwischen kindlichem und mütterlichem Blut ist unmöglich.
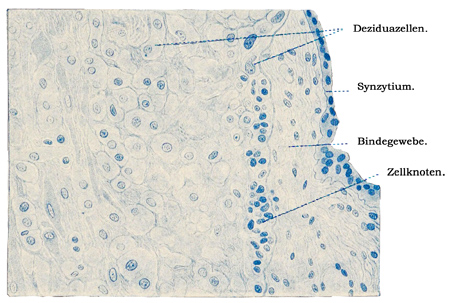
Fig. 325.
Aus einem senkrechten Schnitt einer reifen menschlichen Plazenta. 200mal vergrößert. Technik Nr. 165, S. 426. Zur Orientierung vgl. Fig. 320.
Der mütterliche Abschnitt, die Placenta uterina, ist an der ausgestoßenen Nachgeburt eine dünne Haut, die kompakte Schicht der Decidua basalis (S. 418), die wir jetzt „Basalplatte“ nennen. Sie besteht aus Deziduazellen, Riesenzellen, Bindegewebe und Blutgefäßen. Von ihrer der Placenta fetalis zugekehrten Fläche entspringen verschiedene dicke, bindegewebige Scheidewände, die Septa placentae (Fig. 320). welche Gruppen von Chorionzotten zu einem Büschel „Cotyledo“ zusammenfassen. Diese Septa enden frei, ohne die Membrana chorii zu erreichen, nur am Rande verwachsen sie mit dieser Membran, indem sie zu einer schmalen, der Konkavität der Plazenta parallel laufenden Platte, dem „subchorialen Schlußring“ sich verbinden. Die Arterien der Placenta uterina treten durch die Muskelhaut des Uterus in die Plazenta, woselbst sie durch ihren korkzieherartig gewundenen Verlauf charakterisiert sind, und ziehen, ohne sich zu teilen, gegen die Septa placentae, von wo sie in die intervillösen Räume (das sind die erweiterten mütterlichen Kapillaren) münden. Beim Eintritt der Arterien in die Plazenta findet eine Reduktion ihrer Wandung statt, so daß schließlich nur mehr das Gefäßepithel (endothel) und eine dünne Lage faserigen Bindegewebes, das runde und längliche Kerne enthält, übrig bleibt. Die Venen ziehen in schräg absteigender Richtung gegen die intervillösen Räume, in die sie mit relativ großen Öffnungen münden. Die Mündungsstelle ist in der Regel etwas verengert, an den Rändern der Venenmündungen findet man stets Haftwurzeln; freie Zottenausläufer ragen häufig in die Mündungen der Venen hinein. Auch die Wand der Venen ist reduziert und besteht nur aus Gefäßepithel und einer Bindegewebsschicht, die dünner und weniger scharf von der Umgebung abgegrenzt ist als bei den Arterien. Die Mündungen der Venen liegen nicht in den Septa placentae, sondern in den zwischen den Septa befindlichen Strecken. Der Blutstrom tritt also am Rande des Cotyledo (von den Septen aus) in die intervillösen Räume und wird von den dem Zentrum des Cotyledo gegenüberliegenden Venen wieder zurückgeführt. Jeder Cotyledo ist somit von einem besonderen Strömungsgebiet mütterlichen Blutes umgeben.
Der Nabelstrang geburtsreifer Feten besteht aus den Nabelgefäßen, zwei Arterien und einer etwas dünnwandigeren Vene, welche durch die Whartonsche Sulze zusammengehalten werden. Diese letztere ist eine Mischung von gallertigem Bindegewebe und meist längsverlaufenden, oft netzartig verbundenen Bindegewebszügen, die sowohl an der Oberfläche wie in der Umgebung der Nabelgefäße stärker entwickelt sind. Diese Gefäße sind reichlich mit quer- und längsverlaufenden glatten Muskelfasern versehen, zwischen denen sich ein zartes, meist zu durchbrochenen Häutchen vereintes Bindegewebe findet, das um jede Muskelfaser eine schlauchartige Hülle (kein Sarkolemm) bildet und unter dem Einfluß von Härtungen und Färbungen Interzellularbrücken vortäuschen kann. Im Nabelstrang finden sich ferner noch mehr oder weniger große Reste der Allantois, eines ca. 0,1 mm breiten, aus Epithelzellen gebildeten Stranges. Ein einfaches oder mehrschichtiges vom Amnion gebildetes Plattenepithel überzieht die Oberfläche des Nabelstranges. Feinere Blutgefäße, Nerven und Lymphgefäße fehlen dem reifen Nabelstrang, dagegen findet sich ein die Sulze durchziehendes Netz von Saftkanälen (S. 95).
Die Schleimhaut der Scheide besteht: 1. aus einem geschichteten Plattenepithel (Fig. 24, S. 79), 2. einer papillentragenden Tunica propria, die von einem Geflechte feiner Bindegewebsbündel aufgebaut, spärliche elastische Fasern sowie weiße Blutzellen in wechselnder Menge enthält. Letztere treten zuweilen in Form von Solitärknötchen auf; in diesem Falle findet man an der betreffenden Stelle zahlreiche Lymphozyten auf der Durchwanderung durch das Epithel begriffen. Die Submukosa ist aus lockeren Bindegewebsbündeln und starken elastischen Fasern zusammengesetzt. Drüsen fehlen der Scheidenschleimhaut. Die Muskelhaut wird von einer inneren zirkulären und äußeren longitudinalen Schicht glatter Muskeln gebildet. Die äußere Faserhaut ist ein festes, mit elastischen Fasern reichlich versehenes Bindegewebe. Blutgefäße und Lymphgefäße sind in der Tunica propria und in der Submukosa zu flächenhaft ausgebreiteten Netzen angeordnet. Zwischen den Bündeln der Muskelhaut liegt ein dichtes Netz weiter Venen. Die Nerven bilden in der äußeren Faserhaut ein mit vielen kleinen Ganglien besetztes Geflecht.
Der saure Vaginalschleim enthält abgestoßene Plattenepithelzellen und weiße Blutzellen, sowie nicht selten ein Infusorium, Trichomonas vaginalis.
Äußere weibliche Genitalien.
Die Schleimhaut der äußeren weiblichen Genitalien ist insofern von der Scheidenschleimhaut verschieden, als in der Umgebung der Klitoris und der Harnröhrenmündung zahlreiche, 0,5-3 mm große Schleimdrüsen und an den Labia minora Talgdrüsen (von 0,2-2 mm Größe) ohne Haarbälge sich finden. Die Klitoris wiederholt im kleinen den Bau des Penis; an der Glans clitoridis kommen Tastkörperchen sowie Genitalnervenkörperchen vor. Der Hymen besteht aus einer feinfaserigen, von Blutgefäßen durchzogenen Bindegewebsplatte, die mit Schleimhaut überkleidet ist. Die großen Vorhofdrüsen (Bartholini) gleichen den Bulbourethraldrüsen des Mannes. Die Labia majora sind wie die äußere Haut gebaut.
Technik.
Nr. 157. Zu Übersichtspräparaten des Hodens schneide man den Hoden und Nebenhoden neugeborener Knaben quer durch und behandle die beiden Stücke nach Nr. 110, S. 289.
Nr. 158. Für den feineren Bau der Hodenkanälchen fixiere man Stückchen (von ca. 2 cm Seite) des frisch aus dem Schlachthause bezogenen Stierhodens in ca. 200 ccm Zenkerscher Flüssigkeit (Weiterbehandlung Nr. 8, S. 16). Einbetten und Färben nach Nr. 110, S. 289.
Nr. 159. Noch bessere Präparate erhält man, wenn man den ganzen Hoden einer Maus oder kleine Stücke größerer Hoden in 10 ccm Chrom-Osmium-Essigsäure fixiert (usw. S. 17) und in Saffranin färbt usw. S. 33 (Fig. 302).
Fig. 326.
Isolierte Elemente des Stierhodens, a, c Spermatozyten, b "Spermatoblast", d unfertige, e fertige Spermie. 240mal vergrößert.
Nr. 160. Zur Isolation der Hodenelemente lege man ca. 1 ccm große Stückchen des frischen Stierhodens in ca. 20 ccm Ranviers Alkohol (S. 12) und zerzupfe nach ca. 5-6 Stunden in einem Tropfen desselben Alkohols den Inhalt der Kanälchen. Färben mit Pikrokarmin unter dem Deckglase (S. 47) und Konservieren in verdünntem Glyzerin. Man versäume nicht, mehrere Präparate von verschiedenen Stellen anzufertigen. Man erhält dann nicht selten Sertolische Zellen, die mit den Spermatiden oder mit den aus ihnen hervorgegangenen Spermien zusammenhängen (Fig. 326b), Bildungen, die früher als „Spermatoblasten“ beschrieben worden sind.
Nr. 161. Elemente des Samens. Man bringe einen Tropfen von der aus der Schnittfläche eines frischen Nebenhodens hervortretenden milchweißen Flüssigkeit auf einen reinen Objektträger, setze einen Tropfen Kochsalzlösung zu, lege ein Deckglas auf und betrachte mit starken Vergrößerungen. Oft sind die Spermien regungslos, ein leichtes Erwärmen des Objektträgers über einer Spiritusflamme ruft dann schnell die Bewegungen hervor. Nach einiger Zeit lasse man einen Tropfen destilliertes Wasser unter das Deckglas fließen (S. 47). Die Bewegung der Spermien wird alsbald aufhören; die Köpfe der meisten Spermien präsentieren sich dann von der Fläche, der Schwanz krümmt sich ösenförmig (Fig. 303, 3). Nicht vollkommen reife Spermien tragen noch Zytoplasmareste.