II. Abschnitt. Mikroskopische Anatomie und spezielle Technik. (continued 8)
Reading edition
Nr. 162. Die Haltbarkeit der Spermien gestattet auch Untersuchungen zu forensischen Zwecken. Es handle sich z. B. um die Frage, ob die an einem leinenen Hemd befindlichen Flecken von Samen herrühren. Man schneide von den verdächtigen, steifen Flecken Stückchen von 2-10 mm Seite aus, weiche sie in einem Uhrschälchen mit destilliertem warmem Wasser 5-10 Minuten lang auf und zerzupfe einige Fasern des Stückchens auf dem Deckglase. Bei starken Vergrößerungen (500 : 1) untersuche man hauptsächlich die Ränder der einzelnen Leinenfasern, an denen die Samenfäden ankleben. Nicht selten brechen die Köpfe ab; sie sind durch ihren eigentümlichen Glanz, ihre Gestalt und ihre (beim Menschen geringe) Größe kenntlich.
Nr. 163. Eierstöcke kleiner Tiere behandle man im ganzen, solche größerer Tiere und die des Menschen mit einigen quer zur Längsachse gerichteten Einschnitten versehen, nach Nr. 110, S. 289. Zu Übersichtsbildern (Fig. 310) müssen dicke Schnitte angefertigt werden, weil sonst der Inhalt großer Follikel leicht ausfällt. Nicht jeder Schnitt trifft größere Follikel; man muß oft viele Schnitte machen, bis man eine günstige Stelle trifft. Menschliche Eierstöcke haben eine sehr dicke Tunica albuginea (Fig. 327). Durchschnitte liefern hier viel weniger dankbare Präparate.
Nr. 164. Übersichtspräparate des menschlichen Uterus. Man fixiere Stücke von 2 cm Seite in ca. 100 ccm Müllerformol (usw. Nr. 110, S. 289). Die (zweihörnigen) Uteri vieler Tiere zeigen die oft stark gewundenen Drüsenschläuche schöner, die Anordnung der Muskelschichten ist eine andere, regelmäßigere als beim Menschen. Zu Präparaten der menschlichen Uterusschleimhaut, die womöglich lebensfrisch von Operationen her eingelegt werden sollen, schneide man Stücke von 1 cm Seite aus, die wie Nr. 110, S. 289 behandelt werden. Man erhält wegen der starken Schlängelungen der Drüsen nur immer Bruchstücke der Drüsenschläuche auf den Schnitten (Fig. 317). Die Flimmerhaare sind an fixierten Präparaten nur selten zu sehen.
Nr. 165. Plazenta fixiere man in toto in Zenkers Flüssigkeit; nach ca. 12 Stunden schneide man mit scharfem Messer Stücke von 1-2 cm Seite heraus, die in frische Zenkerlösung eingelegt und nach weiteren 12 Stunden nach Nr. 110, S. 289 weiterbehandelt werden.
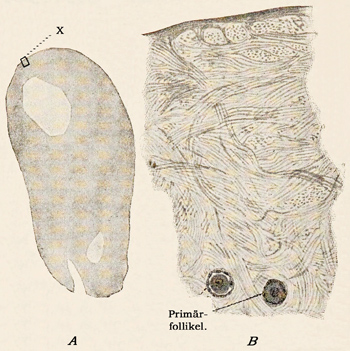
Fig. 327.
A Durchschnitt des Ovarium eines 17jährigen Mädchens. 3mal vergrößert. × Das in B gezeichnete Stück, B Tunica albuginea. Die Zellkerne sind hier nicht sichtbar. 120mal vergrößert. Technik Nr. 163.
IX. Die Haut.
Die äußere Haut (Integumentum commune, Cutis) besteht in ihrer Hauptmasse aus Bindegewebe, welches jedoch nirgends frei zutage liegt, sondern mit einem zusammenhängenden epithelialen Überzuge versehen ist. Neben ihrer Aufgabe, einen mechanischen Schutz zu gewährleisten, der durch den derben Aufbau des bindegewebigen Anteils (Lederhaut, Corium[116], Derma) und durch die Verhornung im Epithel (Oberhaut Epidermis) zustande kommt, besitzt die Haut besondere Einrichtungen, die sie zu einem vielseitig beanspruchten Organ des Körpers gestalten. Alle Spezialeinrichtungen sind durch besondere Entwicklungsformen der Epidermis gekennzeichnet; die Nägel, extrem verhornte Platten, die Haare, bei Tieren fast über den ganzen Körper als Wärmeschutz verbreitet sind solche oberflächlich liegende Epidermisprodukte. In die Lederhaut versenkt, dienen mannigfache Drüsen teils der Regulation der Wasserverdunstung (Schweißdrüsen), teils besonderen Aufgaben (Talgdrüsen, Milchdrüsen).
Die äußere Haut.
Lederhaut. Die Oberfläche der Lederhaut ist von vielen feinen Furchen durchzogen, welche entweder, sich kreuzend, rautenförmige Felder abgrenzen oder, auf längere Strecken parallel laufend, schmale Leistchen zwischen sich fassen. Die rautenförmigen Felder sind am größten Teile der Körperoberfläche zu sehen, während die Leistchen auf die Beugeseite der Hand und des Fußes beschränkt sind. Auf den Feldern und Leistchen stehen zahlreiche, meist kegelförmige Wärzchen, die Papillen, deren Zahl und Größe an den verschiedenen Stellen des Körpers bedeutenden Schwankungen unterworfen ist. Die meisten und größten (bis zu 0,2 mm hohen), oft mehrfach geteilten Papillen finden sich an der Hohlhand und an der Fußsohle, auf deren Leistchen sie ziemlich regelmäßig in zwei Reihen stehen (Fig. 328); sehr gering entwickelt sind sie in der Haut des Gesichts; in höherem Alter können Papillen gänzlich verschwinden.
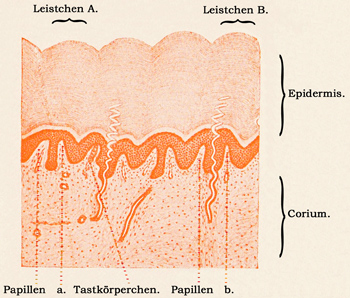
Fig. 328.
Senkrechter Schnitt durch die Fußsohlenhaut des erwachsenen Menschen, genau quer durch die Leistchen. Vier Leistchen sind zu sehen; ihr Coriumteil ist nicht so deutlich von Nachbarleistchen abzugrenzen, wie der epidermoidale. Zu jedem Leistchen gehören zwei Papillen. Zwischen jenen des Leistchens B sieht man den Ausführungsgang einer Knäueldrüse. 25mal vergrößert. Technik Nr. 166, S. 450.
Die Lederhaut besteht vorzugsweise aus netzartig sich durchflechtenden Bindegewebsbündeln, welchen elastische Fasern, Zellen und glatte Muskelfasern beigemengt sind. Die Bindegewebsbündel sind in den oberflächlicheren Schichten der Lederhaut fein und zu einem dichten Flechtwerke vereinigt, in den tieferen Schichten dagegen gröber; hier bilden sie, indem sie sich unter spitzen Winkeln überkreuzen, ein grobmaschiges Netzwerk. Man unterscheidet deshalb an der Lederhaut zwei Schichten: eine oberflächliche papillentragende, von einer feinen Basalmembran überzogene Schicht, Stratum papillare, und eine tiefe Schicht, Stratum reticulare. Beide Schichten sind nicht scharf voneinander getrennt, sondern gehen ganz allmählich ineinander über (Fig. 329). Das Stratum reticulare hängt in der Tiefe mit einem Netze lockerer Bindegewebsbündel zusammen, in dessen weiten Maschen Fetträubchen gelegen sind. Diese Schicht heißt Stratum subcutaneum; massenhafte Fettablagerung in den Maschen dieser Schicht führt zur Bildung des Panniculus adiposus. Die Bündel des Stratum subcutaneum endlich hängen fester oder lockerer mit den bindegewebigen Umhüllungen der Muskeln (den Faszien) oder der Knochen (dem Periost) zusammen.
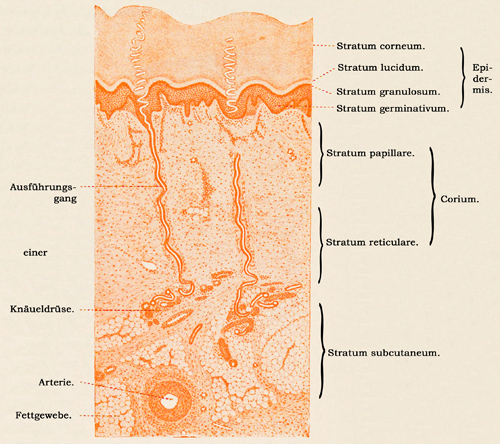
Fig. 329.
Senkrechter Schnitt durch die Haut der Fußsohle eines erwachsenen Menschen. 25mal vergrößert. Technik Nr. 166, S. 450.
Die elastischen Fasern, welche im Stratum papillare feiner, im Stratum reticulare dicker sind, bilden gleichmäßig im Korium verteilte Netze. Das subkutane Gewebe leicht verschiebbarer Haut ist verhältnismäßig arm an elastischen Fasern; besonders reich an solchen ist die Haut im Gesicht und in der Umgebung der Gelenke. Die Zellen sind teils platte, teils spindelförmige Bindegewebszellen, teils weiße Blutzellen, teils Fettzellen. Die Anzahl der zelligen Elemente ist eine sehr wechselnde. Die Muskelfasern gehören fast durchweg der glatten Muskulatur an, sie sind meist an die Haarbälge gebunden (S. 433), nur an wenigen Körperstellen finden sie sich als häutige Ausbreitung (Tunica dartos, wo diese stark von elastischen Fasern durchsetzt ist, Brustwarze). Quergestreifte Muskelfasern finden sich als Ausstrahlung der mimischen Muskeln in der Haut des Gesichts.
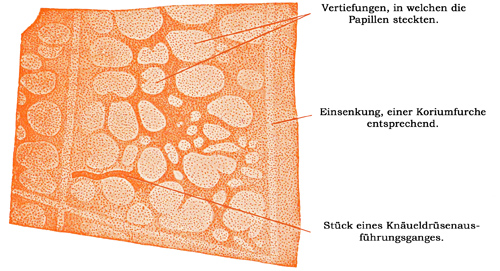
Fig. 330.
Abgelöste Epidermis des menschlichen Fußrückens von der Unterfläche her gesehen. Das Präparat ist gewissermaßen der Abguß, während die mit Papillen besetzte Koriumoberfläche die Matrize darstellt; was am Korium erhaben ist, scheint hier vertieft und umgekehrt. 120mal vergrößert. Technik Nr. 167, S. 451.
Oberhaut (Epidermis). Die Oberhaut besteht aus geschichtetem Plattenepithel, welches mindestens zwei scharf voneinander getrennte Lagen unterscheiden läßt; eine tiefe, die Keimschicht, Stratum germinativum (Malpighi), welche die zwischen den Koriumpapillen befindlichen Vertiefungen ausfüllt, und eine oberflächliche, festere, die Hornschicht, Stratum corneum. Beide Schichten bestehen durchaus aus Epithelzellen, welche in den einzelnen Lagen ein verschiedenes Aussehen zeigen. Die Zellen der tiefsten Lage der Keimschicht sind membranlos, zylindrisch mit länglichem Kerne; darauf folgen mehrere Lagen rundlicher Zellen, zwischen denen die Interzellularspalten besonders weit sind, die Interzellularbrücken deshalb wie Stacheln zwischen den Zellen angeordnet sind (Stachelzellen). Durch die Interzellularbrücken setzen sich an dickeren Epidermisstücken faserige Zellstrukturen in benachbarte Zellen fort. In der Tiefe, meist in der untersten Lage der Keimschicht, findet eine fortwährende Neubildung zelliger Elemente durch indirekte Kernteilung statt. Die Hornschicht ist nicht überall gleich gebaut, man kann vielmehr zweierlei Typen unterscheiden: 1. An Stellen mit dicker Epidermis (Beugefläche der Hand und des Fußes) ist die der Keimschicht zunächst gelegene Zellenschicht durch stark glänzende Körnchen (Keratohyalinkörnchen) ausgezeichnet. Diese Schicht heißt Stratum granulosum (Fig. 331). In der nächsten Schicht findet sich eine die Zellen diffus durchtränkende Masse, das Eleidin (Stratum lucidum). Ganz oberflächlich liegt das breite, eigentliche Stratum corneum. Hier ist das Eleidin fester geworden (Pareleidin)[117], die peripheren Teile der Zellen bilden sich zu verhornten Membranen um, das im Innern der Zellen gelegene Zytoplasma vertrocknet zu einem feinen Maschenwerk; die Interzellularbrücken sind nicht mehr Verbindungsfäden, sondern nur kurze Zähnchen. Der Kern vertrocknet; die Höhle, in welcher er gelegen war, erhält sich aber noch lange. Die so teilweise verhornten, teilweise ausgetrockneten Zellen sind wenig abgeplattet. 2. An Stellen mit dünner Epidermis (übrige Hautoberfläche) ist das Stratum granulosum dünn und von Lücken unterbrochen. Ein Stratum lucidum fehlt vollkommen. Die mit einer Hornmembran umgebenen Zellen des Stratum corneum sind stark abgeplattet und verbinden sich zu Lamellen. Vom Kern geht auch die letzte Spur verloren.
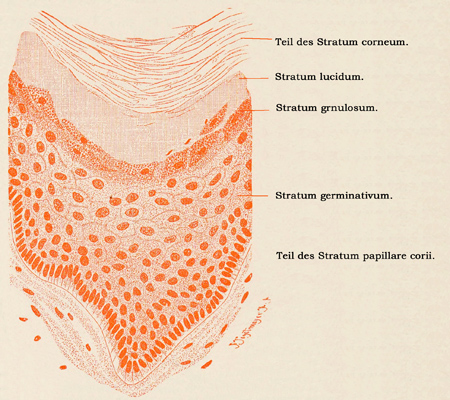
Fig. 331.
Aus einem Schnitt durch die Haut der Fußsohle eines erwachsenen Menschen. 360mal vergrößert. Technik Nr. 166, S. 450.
Die Oberfläche der Hornschicht unterliegt einer beständigen Abschilferung; der hierdurch entstehende Verlust wird durch Nachrücken der Elemente der Keimschicht ausgeglichen.
Die Färbung der Haut hat ihren Grund in der Einlagerung feiner Pigmentkörnchen zwischen und in den Zellen der tieferen Lagen der Epidermis; auch in dem benachbarten Korium finden sich ganz geringe Mengen kleiner Pigmentkörnchen; sie fehlen gänzlich an Vola und Planta, stärker pigmentierte Bindegewebszellen kommen nur an einzelnen Stellen in beträchtlicher Zahl, z. B. in der Umgebung des Anus, vor.
Über die Herkunft des Epidermispigments bestehen zweierlei Meinungen, von denen die eine die Entstehung des Pigments in das Bindegewebe, die andere in das Epithel verlegt. Nach der ersteren Meinung — der sogenannten Übertragungstheorie — wird den Epidermiszellen das Pigment durch pigmentierte Bindegewebszellen zugeführt, die aus dem Korium in die Epidermis wandern und sich dort auflösen sollen. Man findet nun wirklich, z. B. in der menschlichen Haarzwiebel, sehr verschieden gestaltete Pigmentfiguren zwischen den Epithelzellen des Haares; ein Teil dieser Figuren sind Zellen, ob es Bindegewebszellen sind, ist nicht mit Sicherheit erwiesen; ein anderer Teil sind keine Zellen, sondern Füllungen der interzellulären Spalten mit Pigment. Zugunsten der zweiten Meinung spricht die Entwicklungsgeschichte, welche lehrt, daß das Pigment zuerst im Epithel der Haare, ohne Vermittlung von Bindegewebszellen entsteht; auch das Pigment der Netzhaut ist sicher rein epithelialer Abkunft.
Das Hautpigment ist ein Schutz gegen die Folgen intensiver Belichtung und gegen die schädlichen Wirkungen verdunstender Feuchtigkeit.
Die Nägel.
Die Nägel sind Hornplatten, welche auf einer besonderen Modifikation der Haut, dem Nagelbette, aufliegen. Das Nagelbett wird seitlich von ein paar sich nach vorn abflachenden Wülsten, den Nagelwällen, begrenzt. Nagelbett und Nagelwall umfassen eine Rinne, den Nagelfalz, in welchen der Seitenrand des Nagels eingefügt ist (Fig. 332). Der hintere Rand des Nagels, die Nagelwurzel, steckt in einer ähnlichen, nur noch tieferen Rinne; hier findet das hauptsächlichste Wachstum des Nagels statt; diese Stelle heißt Matrix. Der vordere, freie Nagelrand überragt den Nagelsaum, einen schmalen, saumartigen Vorsprung am Vorderende des Nagelbettes.
Das Nagelbett besteht aus Korium und aus Epithel. Die viele elastische Fasern enthaltenden Bindegewebsbündel des Korium verlaufen teils parallel der Längsachse des Fingers, teils senkrecht vom Periost der Phalange zur Oberfläche. Die Oberfläche des Korium besitzt keine Papillen, sondern feine, longitudinal ziehende Leistchen. Dieselben beginnen niedrig an der Matrix, nehmen nach vorn an Höhe zu und enden plötzlich an der Stelle, wo der Nagel sich von seiner Unterlage abhebt. Das Epithel (Stratum germinativum des Nagels) ist ein mehrschichtiges Pflasterepithel, von gleichem Baue wie die Keimschicht der Epidermis. Es bedeckt die Leistchen, füllt die zwischen denselben befindlichen Furchen aus und ist gegen das Stratum corneum des Nagels scharf abgesetzt. Die Matrix besteht ebenfalls aus Korium und Epithel; das Korium ist durch hohe Papillen ausgezeichnet; das mehrschichtige Pflasterepithel ist sehr dick und ist hier vom Stratum corneum nicht scharf abgesetzt, sondern geht allmählich in dieses über. Hier ist die Stelle, wo durch fortwährende Teilung der Epithelzellen das Material zum Wachstume des Nagels geliefert wird. Deswegen heißt das Epithel hier auch Keimschicht des Nagels. Die Ausdehnung der Matrix ist durch die mit unbewaffnetem Auge sichtbare Lunula, ein weißes, nach vorn konvexes Feld, gekennzeichnet; sie wird bedingt durch die dicke gleichmäßig ausgebreitete Keimschicht. Der Nagelwall zeigt den gewöhnlichen Bau der äußeren Haut. Das Stratum germinativum desselben geht allmählich in dieselbe Schicht des Nagelbettes über. Die Hornschicht des Nagelwalles reicht bis in den Nagelfalz und überzieht als „Eponychium“ noch einen kleinen Teil des Nagelrandes, hört aber bald sich verdünnend auf (Fig. 332).
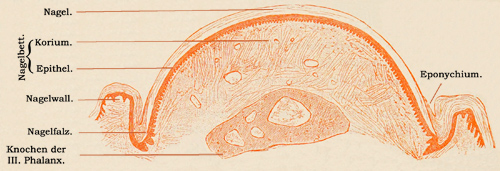
Fig. 332.
Dorsale Hälfte eines Querschnittes des dritten Fingergliedes eines Kindes. 15mal vergrößert. Die Leistchen des Nagelbettes sehen im Querschnitte wie Papillen aus. Technik Nr. 168, S. 451.
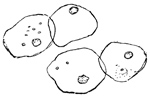
Fig. 333.
Elemente des menschlichen Nagels. 240mal vergrößert. Technik Nr. 169, S. 451.
Der Nagel selbst besteht aus verhornten Epidermisschüppchen, die sehr fest miteinander verbunden sind und sich von den Schüppchen des Stratum corneum der Epidermis dadurch unterscheiden, daß ihr Kern erkennbar bleibt (Fig. 333).
Haare und Haarbälge.
Die Haare sind biegsame, elastische Hornfäden, welche fast über die ganze Körperoberfläche verbreitet und im Bereich der Kopfhaut zu kleinen Gruppen vereint sind. Man nennt den frei über die Haut hervorragenden Teil des Haares Schaft, Scapus; der in die Haut schräg eingesenkte Teil wird Haarwurzel, Radix pili, genannt; diese ist an ihrem unteren Ende zu einem hohlen Knopf, der Haarzwiebel, Bulbus pili, aufgetrieben, welcher von einer Koriumbildung, der Haarpapille, ausgefüllt wird (Fig. 334).
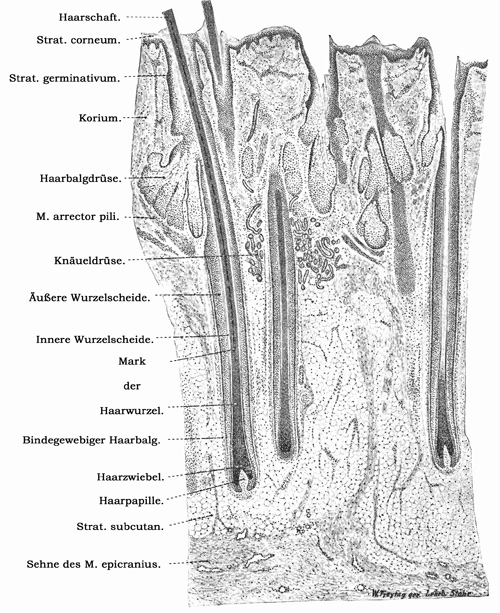
Fig. 334.
Aus einem dicken Durchschnitte der menschlichen Kopfhaut. 20mal vergrößert. Technik Nr. 171, S. 451.
Jede Haarwurzel steckt in einer Modifikation der Haut, dem Haarbalge, an dessen Aufbau sich Korium und Epidermis beteiligen; die von letzterer gelieferten Teile werden Wurzelscheiden genannt; was vom Korium abstammt, heißt bindegewebiger Haarbalg. In den Haarbalg münden seitlich oben zwei bis fünf Drüsen, die Haarbalgdrüsen, Glandulae sebaceae. Schräg von der Koriumoberfläche herabziehende, mit elastischen Ursprungssehnen versehene Bündel glatter Muskelfasern, M. arrector pili, setzen sich unterhalb einer Haarbalgdrüse an den bindegewebigen Haarbalg; die Insertionsstelle dieser Fasern findet sich stets an der gegen die Tiefe des Korium gekehrten Seite (Fig. 334); ihre Kontraktion wird also eine Aufrichtung von Haarbalg und Haar zur Folge haben. Der M. arrector fehlt den Wollhaaren der Nase, Wangen, Lippen, ferner den Zilien und den Vibrissae.
Das Haar besteht ganz aus Epithelzellen, welche in drei scharf unterscheidbare Schichten geordnet sind:
1. das Oberhäutchen des Haares, Haarkutikula, welches die Oberfläche des Haares überzieht,
2. die Rindensubstanz, welche die Hauptmasse des Haares bildet,
3. die Marksubstanz, welche in der Achse des Haares gelegen ist.
Das Oberhäutchen besteht aus dachziegelförmig übereinander gelegenen, durchsichtigen Schüppchen: verhornten, kernlosen Epithelzellen. Die Rindensubstanz besteht am Haarschaft aus langgestreckten, verhornten, mit einem linienförmigen Kerne versehenen Epithelzellen, welche sehr innig miteinander verbunden sind; an der Haarwurzel werden die Zellen um so weicher und runder, ihr Kern wird um so rundlicher, je näher die Elemente sie der Haarzwiebel gelegen sind. Die Marksubstanz fehlt vielen Haaren; auch da, wo sie vorhanden ist (an dickeren Haaren), erstreckt sie sich nicht durch die ganze Länge des Haares. Sie besteht aus kubischen, Keratohyalin (S. 430) enthaltenden Epithelzellen, welche meist in doppelter Reihe nebeneinander gelegen sind und einen Kernrest enthalten. In den gefärbten Haaren findet sich Pigment, und zwar sowohl gelöst, als auch in Form von Körnchen, welche teils zwischen, teils in den Zellen der Rindensubstanz gelegen sind. Ferner enthält jedes Haar, das seine volle Entwicklung erreicht hat, kleinste Luftbläschen; sie liegen sowohl in der Rindensubstanz, als auch in der Marksubstanz, und zwar interzellulär.
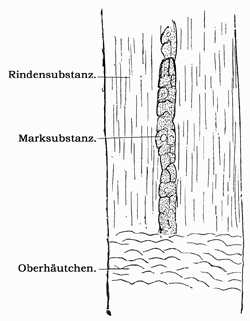
Fig. 335.
Stück eines weißen menschlichen Haares. 240mal vergrößert. Technik Nr. 170, S. 451.
In schwarzen Haaren nimmt das Pigment den gesamten Querschnitt, also auch das Mark ein; die Altersbleichung beruht auf einer Vermehrung des Luftgehaltes.
Der Haarbalg feinerer (Woll-) Haare wird nur durch die epidermoidalen Wurzelscheiden gebildet, bei stärkeren Haaren dagegen beteiligt sich auch das Korium am Aufbau des Balges. Wir unterscheiden am Haarbalge stärkerer Haare folgende Schichten: Zu äußerst eine gefäß- und nervenreiche, aus lockeren Bindegewebsbündeln gebildete Längsfaserlage, die auch elastische Fasern enthält; darauf folgt eine dickere Lage ringförmig geordneter, feiner Bindegewebsbündel, die Ringfaserlage, welcher sich die Glashaut anschließt.
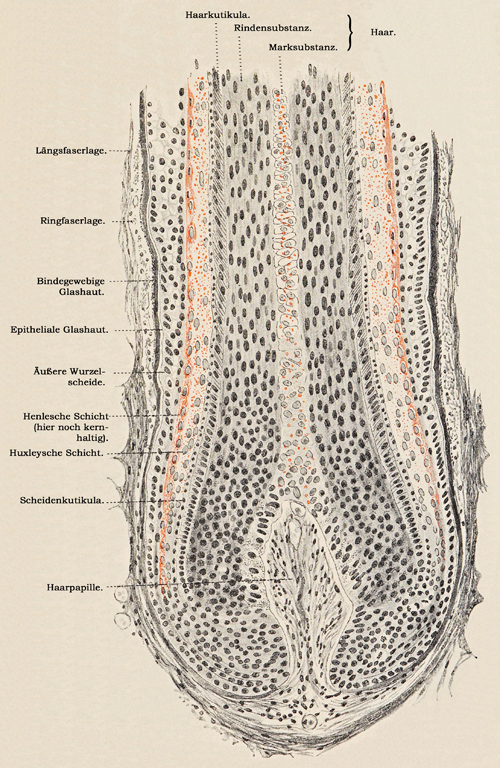
Fig. 336.
Längsschnitt des untersten Abschnittes einer Haarwurzel; die Keratohyalinkörnchen sind hier rot gefärbt. Man beachte, wie die Kerne der Henleschen Schicht nach aufwärts schrumpfen. Aus einem senkrechten Schnitte der menschlichen Kopfhaut. 200mal vergrößert. Technik Nr. 171, S. 451.
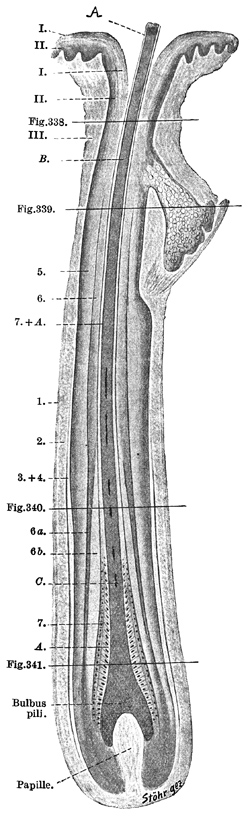
Fig. 337.
Schema eines Kopfhaares.
A. Haarkutikula. B. Rinde. C. Mark. I. Str. corn. II. Str. germinativ. III. Korium. 1. Längsfasersch. 2. Ringfasersch. 3. Bindegew. Glashaut. 4. Epith. Glashaut. 5. Äuß. Wurzelsch. 6. Inn. Wurzelsch. 6a. Henles Schicht. 6b. Huxleys Schicht. 7. Scheidenkutikula.
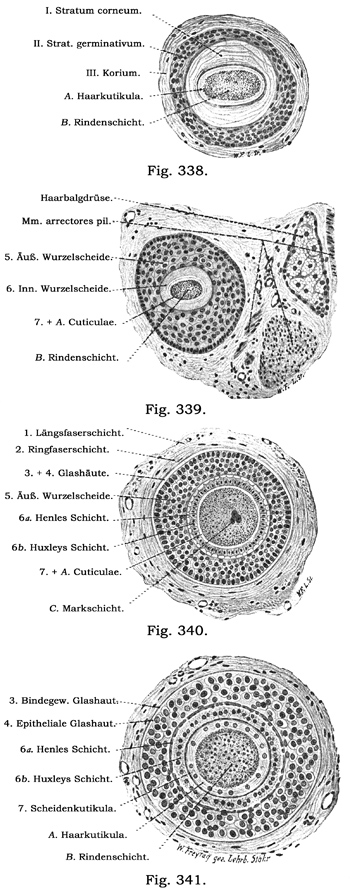
Fig. 338. Fig. 339. Fig. 340. Fig. 341.
Vier Schnitte des Haares in verschiedenen Höhen. 160mal vergrößert. Technik Nr. 171, S. 451.
Diese Haut besteht aus zwei Schichten (Fig. 336), einer äußeren, bald deutlich längsfaserigen, bald homogenen Lage, welche bindegewebiger Abkunft ist und einer inneren, stets homogenen, mit feinen Poren versehenen Lage, die vom Epithel der äußeren Wurzelscheide ausgeschieden wurde. Oft sind beide Schichten zu einer glashellen Membran vereint.
Der somit aus Längs- und Ringfaserlage und äußerer Glashaut bestehende, bindegewebige Haarbalg ist in voller Ausbildung nur in der unteren Hälfte des ganzen Haarbalges zu sehen. Nach innen von der inneren Glashaut liegt die äußere Wurzelscheide, welche als Fortsetzung der Keimschicht der Epidermis aus geschichtetem Pflasterepithel besteht; einwärts von dieser liegen Fortsetzungen des Stratum granulosum und Stratum corneum, welch letzteres bis zur Mündung der Talgdrüsen reicht, während das Stratum granulosum sich noch etwas abwärts erstreckt: dicht darunter (papillenwärts) beginnt ohne Übergang die innere Wurzelscheide, welche sich in dem unteren Teile des Haarbalges in zwei scharf getrennte Schichten differenziert.
Die äußere derselben, die Henlesche Schicht, besteht aus einer einfachen oder doppelten Lage kernloser Epithelzellen (hier und da ist ein atrophischer Kern vorhanden), während die innere, die Huxleysche Schicht, sich aus einer einfachen Lage kernhaltiger Zellen aufbaut. Die Innenfläche dieser Schicht endlich wird von einem Häutchen, der Scheidenkutikula, überzogen, welches einen ähnlichen Bau wie die Haarkutikula zeigt. Schon in der Höhe der Papille treten in den Zellen der Henleschen Schicht, etwas weiter oben auch in denen der Huxleyschen Schicht Keratohyalinkörnchen auf (Fig. 336), die bald weiter oben verschwinden; von da aufwärts sind die Elemente der inneren Wurzelscheide verhornt.
Gegen den Grund des Haarbalges verschmälert sich die äußere Wurzelscheide und hört am Halse der Papille auf; ihre Elemente sind dort stark in die Quere gezogen und sehen auf tangentialen Längsschnitten der Wurzelscheide wie kurze, zirkuläre, glatte Muskelfasern aus. Die Elemente der inneren Wurzelscheide und der Cuticulae werden alle zu kernhaltigen Zellen, die sich als getrennte Schichten noch bis nahe an den Hals der Papille unterscheiden lassen; erst dort verlieren sie ihre scharfe Abgrenzung, sind jedoch von den Zellen des Bulbus pili durch die Pigmentierung letzterer zu unterscheiden (Fig. 336). Auch die Haarpapille ist von einer dünnen, aber deutlich doppelt konturierten Fortsetzung der bindegewebigen Glashaut überzogen.
Entwicklung der Haare.
Die erste Anlage des Haares tritt Ende des dritten Embryonalmonats auf, und zwar zuerst nur in Form einer Epidermisverdickung, welche durch Verlängerung der tiefst gelegenen und Vermehrung der mittleren Zellen der Epidermis bedingt wird (Fig. 342). Dieser „Haarkeim“ wächst, sich verlängernd (Fig. 343), in das Korium hinab und wird dadurch zu einem soliden epithelialen Zapfen, dem „Haarzapfen“, an dessen stumpfem Ende eine dichtere Anhäufung von Bindegewebszellen, die Anlage der Haarpapille sich entwickelt hat (Fig. 344); eine zweite, an der abwärts gekehrten Seite des Haarzapfens auftretende Ansammlung von zelligen Elementen des Korium ist die Anlage des Muscul. arrector (Fig. 345). Das untere Ende des Haarzapfens umwächst die Papille, die ganze Anlage wird damit zum Bulbuszapfen, der zwei Ausbuchtungen treibt, eine obere, die künftige Haarbalgdrüse und eine untere, das künftige Haarbeet (Fig. 346).
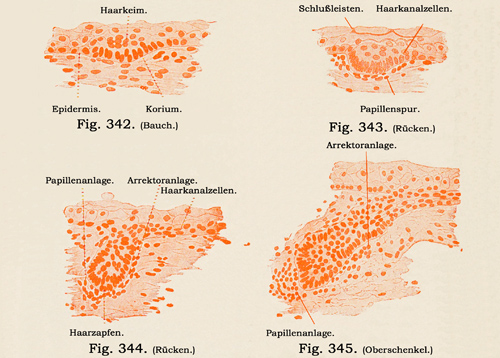
Fig. 342-345. Senkrechte Schnitte der Haut eines 5monatigen menschl. Fetus. 200mal vergrößert. Technik Nr. 172, S. 451.
Die der Papille zunächst liegenden Epithelzellen des Bulbuszapfens entwickeln sich zum Haarkegel (Fig. 347), während die übrigen Epithelzellen zur äußeren Wurzelscheide werden. Der Haarkegel wächst in die Länge, seine peripherischen Zellen werden zur inneren Wurzelscheide (Fig. 348), seine axialen Zellen werden zum Haar, die zwischen beiden liegenden Epithelzellen liefern die Scheiden- und Haarkutikula. In diesem Stadium wird das Haar vollkommen, auch an seiner Spitze, von der von oben nach unten allmählich verhornenden inneren Wurzelscheide eingeschlossen: Stadium des Scheidenhaares (Fig. 348).
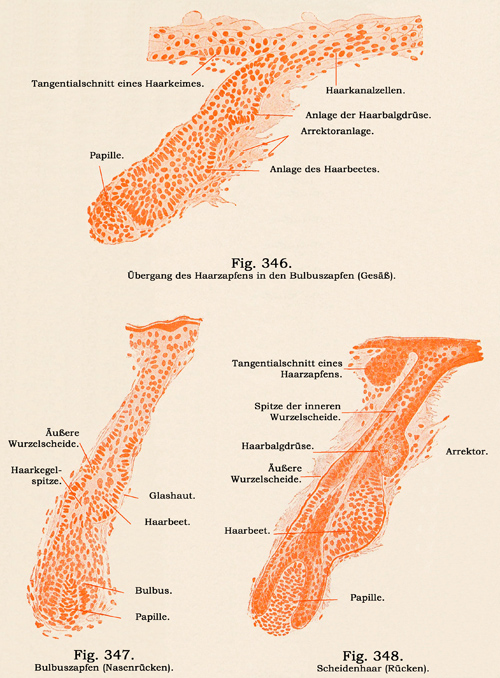
Fig. 346-348. Senkrechte Schnitte der Haut eines 5monatigen menschlichen Fetus. 200mal vergrößert. Technik Nr. 172, S. 451.
Unterdessen verhornen auch die axialen, im oberen Abschnitt des Haarzapfens befindlichen Zellen, zerfallen und lassen so einen horizontal in der Epidermis liegenden, gegen die freie Oberfläche geschlossenen Kanal, den Haarkanal (Fig. 350), entstehen, in welchem die innere Wurzelscheide allmählich heraufrückt und dann dort zerfällt, so daß die nun gleichfalls verhornte Haarspitze frei aus der inneren Wurzelscheide herausragt. Dann erfolgt der Durchbruch des Haares, indem der Haarkanal sich an der freien Oberfläche öffnet; die innere Wurzelscheide reicht dann nur mehr bis zur Haarbalgdrüsenmündung herauf. Aus der bindegewebigen Hülle des Bulbuszapfens sind unterdessen äußere Glashaut, Ring- und Längsfaserlage geworden, während die innere Glashaut etwas später von den basalen Teilen der peripherischen Zellen der äußeren Wurzelscheide ausgeschieden wird. So besitzt das eben durchgebrochene Haar alle Teile des fertigen Haares.
Auch nach der Geburt bis in das spätere Alter können Haare in der beschriebenen Weise entstehen.
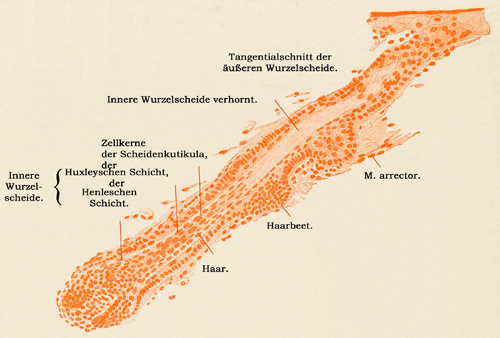
Fig. 349.
Aus einem senkrechten Schnitt der Stirnhaut eines 5monatigen menschlichen Fetus. 200mal vergrößert. Differenzierung der Scheiden des Haares. Über der Stelle, wo die äußere Wurzelscheide tangential getroffen ist, sieht man das zerfallende Ende der inneren Wurzelscheide in den nur zum kleinen Teil vom Schnitt getroffenen Haarkanal hineinragen. Technik Nr. 172, S. 451.
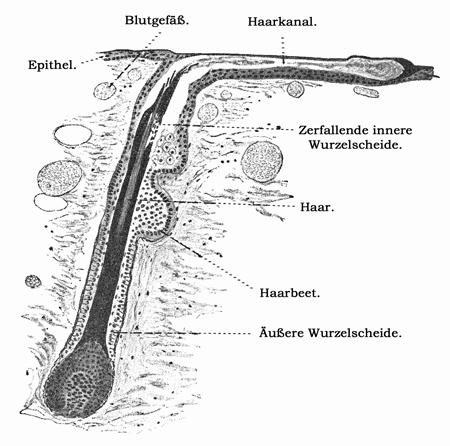
Fig. 350.
Aus einem senkrechten Schnitt der Rückenhaut eines 51/2monatigen menschlichen Fetus. 120mal vergrößert. Die Färbung mit Eisenhämatoxylin hat die verhornenden Teile so stark geschwärzt, daß ihre Details unsichtbar sind. Technik Nr. 172, S. 451.
Wachstum der Haare und der Wurzelscheiden.
Das Wachstum des Haares, der Scheidenkutikula und der inneren Wurzelscheide vollzieht sich durch fortgesetzte mitotische Teilung der am Bulbus pili befindlichen Epithelzellen, der Matrixzellen, die verhornend sich den früher verhornten Zellen von unten her anfügen. Somit ist die Spitze der älteste, der unmittelbar über dem Bulbus liegende Abschnitt der jüngste Haarteil. Die äußere Wurzelscheide dagegen wächst in radiärer Richtung von der Innenfläche der Glashaut gegen die Achse des Haares.
Haarwechsel.
Kurz vor und nach der Geburt vollzieht sich ein totaler Haarwechsel; aber auch beim erwachsenen Menschen findet ein beständiger, nicht periodischer Ersatz für die ausfallenden Kopf- und Barthaare statt. Dieser Prozeß beginnt mit einer Verdickung der Glashaut und der Ringfaserschicht, während die Matrixzellen die Produktion (zuerst) der inneren Wurzelscheide, (dann) der Cuticulae und des Haares einstellen. Der hohle Bulbus verhornt und wird zu einem soliden Kolben, aus der Hohlwurzel ist damit eine Vollwurzel, aus dem Bulbushaar ein „Kolbenhaar“ geworden.
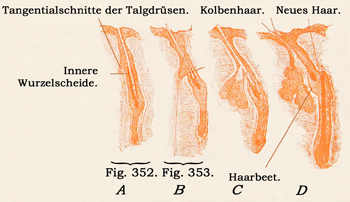
Fig. 351.
Aus einem Schnitte durch den Nasenrücken eines 71/2monatigen menschl. Fetus. 50mal vergr. Vier Stadien des Haarwechsels. In A ist die innere Wurzelscheide noch in beträchtlicher Länge vorhanden, in B, C, D geht sie allmählich verloren. × Haarkegel des neuen Haares. Technik Nr. 173, S. 451.
Die Matrixzellen vermehren sich, ohne zu Haar- oder Scheidenelementen zu werden, innere Wurzelscheide und Kolbenhaar bilden sich von unten nach oben immer mehr zurück bis zur Höhe unter der Mündung der Talgdrüsen: an dieser Stelle, dem Haarbeet (Fig. 351D), bleibt das nun gänzlich verhornte Kolbenhaar längere Zeit stehen und fällt später aus. Die durch das Zugrundegehen des Haares leer gewordene, äußere Wurzelscheide, der „Epithelstrang“, hat sich dabei verkürzt (Fig. 351B) und zieht die atrophisch gewordene, in ihrer Gestalt veränderte Haarpapille mit in die Höhe, während die Schichten des bindegewebigen Haarbalges zurückbleiben und den „Haarstengel“ bilden (Fig. 353). Nach einiger Zeit folgt eine von den Zylinderzellen des Haarbeetes ausgehende Regeneration der Elemente des Epithelstranges, die sich bis auf die alte Papille herab erstreckt. Auf dieser produzieren neue Matrixzellen nach dem oben für die erste Haarentwicklung beschriebenen Modus ein junges Haar (Fig. 351C), das allmählich zur Ausbildung der alten Papillenform in die ursprüngliche Tiefe rückt, mit seiner Spitze aber sich neben dem Kolbenhaar, das später samt den ihm anliegenden Zellen des Haarbeetes ausfällt, in die Höhe schiebt (Fig. 351D).
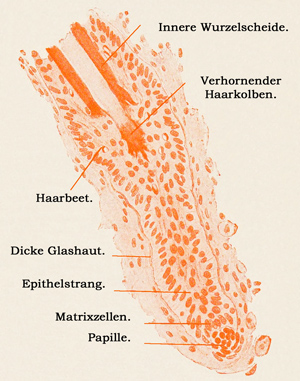
Fig. 352.
Stück der Fig. 351A. 200mal vergrößert.
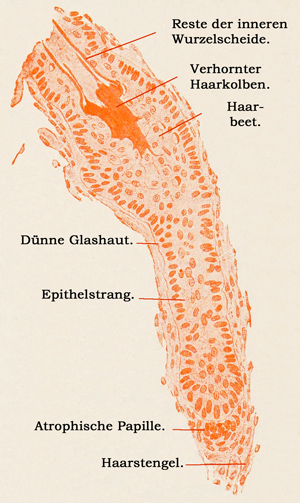
Fig. 353.
Stück der Fig. 351B. 200mal vergrößert. Der Epithelstrang ist nur scheinbar länger als derjenige der Fig. 352, weil das Haar in größerer Länge zugrunde gegangen ist (vgl. Fig. 351B).
Drüsen der Haut.
Die Haarbalgdrüsen (Talgdrüsen, Glandul. sebaceae) sind entweder unverästelte oder verästelte alveoläre Einzeldrüsen. Wir unterscheiden einen kurzen Ausführungsgang (Fig. 354A a) und den von einer verschieden großen Anzahl von Säckchen (t) gebildeten Drüsenkörper. Der Ausführungsgang wird von einer Fortsetzung der äußeren Wurzelscheide, also von geschichtetem Plattenepithel ausgekleidet, welches unter allmählicher Verminderung seiner Lagen in das Drüsenepithel übergeht. Dieses besteht zu äußerst aus niedrigen, kubischen Zellen; nach innen davon liegen größere, rundliche Zellen in allen Stadien der Verfettung; dabei geht ihr Kern zugrunde (Fig. 354B). Die völlig verfetteten Zellen werden zum Sekret, dem Hauttalg (Sebum), einem im Leben halbflüssigen Stoff, der aus Fett und zerfallenen Zellen besteht. Während die Talgdrüsen der gröberen Haare als Anhänge der Haarbälge auftreten (Fig. 334), waltet bei den Wollhaaren das umgekehrte Verhältnis, indem nämlich die Wollhaarbälge wie Anhänge der mächtig entwickelten Talgdrüsen erscheinen (Fig. 354A). Mit den Haaren sind die Talgdrüsen über den ganzen Körper verbreitet und fehlen nur, wie jene, am Handteller und an der Fußsohle. Indessen gibt es auch Talgdrüsen, die mit keinem Haarbalge verbunden sind, z. B. am roten Lippenrande, an den Labia minora, an Glans und Praeputium penis, an welch letzterem Orte sie unter dem Namen der Glandulae praeputiales bekannt sind.
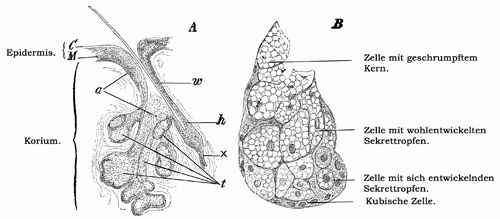
Fig. 354.
A Aus einem vertikalen Schnitte durch den Nasenflügel eines Kindes. 40mal vergrößert. C Stratum corneum. M Stratum germinativum, t aus 4 Säckchen bestehende Talgdrüse, a Ausführungsgang derselben, w Wollhaar im Ausfallen begriffen, h Haarbalg desselben, an der Basis zur Bildung eines neuen Haares ansetzend ×.
B Aus einem vertikalen Schnitte der Nasenflügelhaut eines neugeborenen Kindes. 240mal vergrößert. Säckchen einer Talgdrüse. Drüsenzellen in verschiedenen Stadien der Sekretbildung enthaltend. Technik Nr. 174, S. 451.
Dieselben können oft gänzlich fehlen; ihre Benennung als „Tysonsche Drüsen“ ist nicht berechtigt, weil Tyson damit regelmäßig vorhandene Einsenkungen des Oberflächenepithels, Krypten, bezeichnet, die, 1/2-1 cm lang, meist in der Form einer flachen Tasche in der Nähe des Frenulum praeputii vorkommen. An Glans und Praeputium clitoridis fehlen sowohl Präputialdrüsen, wie Krypten. Bei Feten ist die Innenfläche des Präputium und die Oberfläche der Glans durch eine solide Epithelmasse verbunden, die sich oft erst nach der Geburt unter Bildung konzentrisch geschichteter Epithelperlen löst.
Die Talgdrüsen sind stets in den oberflächlichen Schichten des Korium, im Stratum papillare, gelegen. Ihre Größe schwankt von 0,2 mm bis zu 2,2 mm; letztere finden sich in der Haut der Nase, wo ihre Ausführungsgänge schon mit unbewaffnetem Auge sichtbar sind.
Die Knäuel-(Schweiß-)drüsen (Glandul. sudoriparae) sind lange, unverästelte Röhren, die an ihrem unteren Ende zu einem rundlichen Knäuel von 0,3-7 mm (in der Achselhöhle) Durchmesser zusammengeballt sind. Wir unterscheiden den Ausführungsgang (Fig. 329) vom Knäuel. Der Ausführungsgang verläuft gerade oder geschlängelt durch das Korium, tritt zwischen zwei Papillen in die Epidermis, in welcher er bei dickem Stratum corneum spiralig gewunden ist, und mündet mit einem rundlichen, mit unbewaffnetem Auge eben noch sichtbaren Lumen, der Schweißpore, auf die Hautoberfläche. Die Wandung des Ausführungsganges besteht aus einer mehrfachen Schicht kubischer mit einer Kutikula versehener Zellen, die nach außen von einer feinen Membrana propria und von längsverlaufenden Bindegewebsbündeln überzogen werden. Der Knäuel ist ein einziges, nur an zirkumanalen und axillaren Schweißdrüsen gelegentlich verästeltes, vielfach gewundenes Rohr, dessen Wand von einer etwas stärkeren Membrana propria, von längsverlaufenden, glatten Muskelfasern und von einer einfachen Lage von Drüsenzellen gebildet wird.
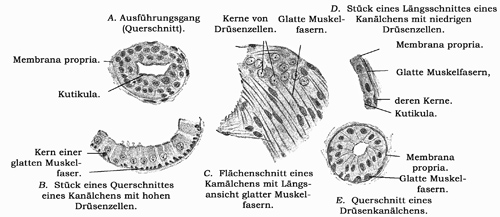
Fig. 355.
Knäueldrüsenstücke. Aus einem Schnitte durch die Haut A B C D der Achselhöhle, E der Fingerbeere eines 23jährigen Mannes. 230mal vergrößert. E ist kein reiner Querschnitt, der obere Teil ist, wie die runde Form zweier Kerne zeigt, schräg getroffen. Technik wie Nr. 171, S. 451.
Die nie in geschlossener Lage sich findenden Muskelfasern sind die Fortsetzung der tiefen Zellenschicht des Ausführungsganges, also ektodermaler Abkunft. Sie kommen reichlicher an den größeren Knäueldrüsen vor.
Die Drüsenzellen sind nach dem Grade ihrer Sekretfüllung niedrig kubisch bis hoch zylindrisch, ihre freie Oberfläche ist mit einem schmalen Saum versehen; die sekretgefüllten Zellen enthalten Körnchen verschiedener Natur (Sekretvorstufen und Fett-, auch zuweilen Pigmentkörnchen), auch binnen- und zwischenzellige Sekretkanälchen finden sich hier. Das Sekret ist gewöhnlich eine fettige, zum Einölen der Haut bestimmte Flüssigkeit; nur unter dem Einflusse veränderter Innervation kommt es in den Knäueldrüsen zur Absonderung jener wässerigen Flüssigkeit, die wir Schweiß nennen; eine Zerstörung der Drüsenzellen findet weder bei dem einen, noch bei dem anderen Sekretionsmodus statt. Die Knäueldrüsen sind über die ganze Oberfläche der Haut verbreitet und fehlen nur an der Glans penis und an der Innenfläche der Vorhaut. Am reichlichsten sind sie an Handteller und Fußsohle zu finden.
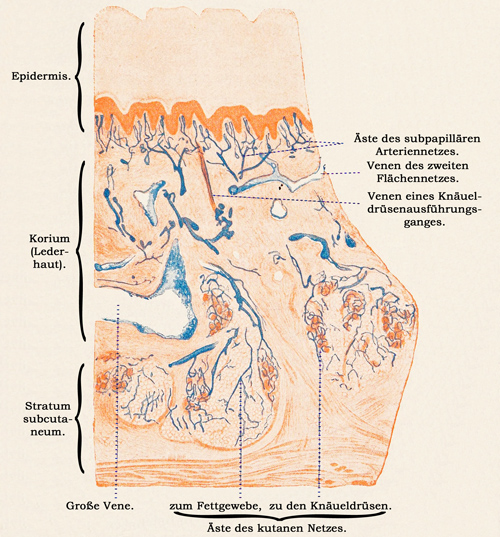
Fig. 356.
Stück eines senkrechten Schnittes der injizierten Haut der menschlichen Fußsohle. 16mal vergrößert. Technik Nr. 175, S. 452. Die größeren Venen sind nicht ganz mit Injektionsmasse gefüllt.
Die Blutgefäße, Lymphgefäße und Nerven der Haut.
Die Arterien der Haut entspringen aus einem über den Faszien gelegenen Netze und ziehen, sich verästelnd, gegen die Oberfläche der Haut empor. Diese Verästlungen anastomosieren miteinander und mit solchen benachbarter Arterien und bilden so ein in der unteren Schicht der Lederhaut gelegenes Flächennetz, das kutane Netz. Die zur Haut führenden Arterien sind also keine Endarterien (s. S. 337). Von diesem Netz aus werden zwei Kapillargebiete versorgt; das tiefere ist für das Fettgewebe bestimmt (Fig. 356), das oberflächlichere tritt in Form von korbartig die Knäueldrüsen umspinnenden Geflechten auf. Aus dem kutanen Netze steigen Zweige auf, die im oberen Drittel des Korium anastomosierend ein zweites Flächennetz darstellen, das subpapilläre Netz; aus diesem entspringen feinste Zweige, welche eine kurze Strecke in der Richtung der Papillarreihen verlaufen und Ästchen in diese schicken. Diese kleinsten Zweige anastomosieren nicht miteinander, sind also Endarterien. Aus dem subpapillären Netz gehen auch die für Haarbälge und Talgdrüsen bestimmten Ästchen hervor. Das aus den kapillaren Gefäßen der Papillen, der Haarbälge und der Talgdrüsen zurückkehrende Blut wird von Venen aufgenommen, die ein dicht unter den Papillen gelegenes Flächennetz bilden und nach abwärts zuweilen mit einem zweiten, dem ersten ganz nahe gelegenen Flächennetze verbunden sind. Von da führen neben den Arterien herabsteigende Venenstämmchen zu einem dritten, in der unteren Koriumhälfte gelegenen Netze, welches nicht so flächenhaft ausgebreitet ist, wie seine Vorgänger. Dieses Netz nimmt die von den Schweißdrüsen und dann die von den Fettläppchen herkommenden Venen auf. Bemerkenswert ist noch, daß von den Venen der Schweißdrüsen ein oder zwei Äste längs des Ausführungsganges zum venösen Netze des Stratum papillare ziehen, und daß die Haarpapille ein selbständiges arterielles Ästchen erhält. Von dem dritten Venennetze führen stärkere Venen bis zur unteren Hautgrenze, wo sich ein viertes, der Fläche nach ausgebreitetes, „subkutanes“ Venennetz findet, aus dem größere Stämmchen in das subkutane Gewebe selbst abbiegen, die sich dann zu den großen, zum Teil mit besonderen Namen versehenen, subkutanen Venen verbinden.
Die Lymphgefäße bilden zwei kapillare Flächennetze, von denen das aus feineren Röhrchen und engeren Maschen bestehende in dem Stratum papillare corii unterhalb des Blutgefäßnetzes liegt, das andere, weitmaschigere im Stratum subcutaneum seinen Sitz hat. Auch in der Umgebung der Haarbälge, der Talg- und der Knäueldrüsen befinden sich besondere Lymphkapillarnetze.
Die (an der Handfläche und an der Fußsohle sehr reichlich vorhandenen) markhaltigen Nerven bilden im tiefsten Abschnitt des Stratum subcutaneum ein weitmaschiges Geflecht. Seine nach oben abgehenden Äste bilden weitere Geflechte, deren oberflächlichstes, in der Nähe der Papillenbasen gelegenes, in Faserbündel und einzelne Fasern zerfällt, die zu allen Papillen und Leistchen aufsteigen. Von allen Geflechten werden marklose Fasern zu den Blutgefäßen und den Knäueldrüsen, und markhaltige Fasern zu den verschiedenen Endapparaten und zur freien (marklosen) Endigung (S. 263) abgegeben. Auch an die Haare treten markhaltige Nervenfasern, welche bis unterhalb der Einmündungsstelle der Haarbalgdrüsen verlaufen; hier teilen sie sich, verlieren ihr Mark und enden als nackte, meist längsverlaufende Achsenzylinder mit löffelförmiger Verbreiterung auf der Glashaut (epilemmale Nervenendigung); bei den Tasthaaren (Sinushaaren) der Tiere entspringen von diesen Nerven feine Zweige, welche durch die Glashaut des Haarbalges bis in die äußere Wurzelscheide treten und dort in Tastmenisken enden (S. 264). Die Haarpapille besitzt keine Nerven. Das Korium des Nagelbettes ist außerordentlich reich an markhaltigen Nervenfasern, deren marklose Endverästlungen in den tieferen Lagen in Golgi-Mazzonischen Körperchen (S. 266) und knäuelförmig zusammengeballten Geflechten, in den oberflächlichen, unter den Leistchen gelegenen Schichten ebenfalls in Knäueln oder in Netzen und Fadenschlingen enden. Andere Nervenendapparate, z. B. Lamellenkörperchen, Tastzellen und Tastkörperchen fehlen im Nagelbett. Die Nerven der Knäueldrüsen verhalten sich ähnlich denen der Mundhöhlendrüsen (S. 301).
Besondere Sinnesorgane sind die von Pinkus entdeckten Haarscheiben, kleine, rundliche, mit unbewaffnetem Auge beim lebenden Menschen eben sichtbare Gebilde, die sich stets in nächster Nähe der Haare befinden und reich an Nerven sind. Sie sind auf mikroskopischen Einzelschnitten weniger leicht als auf Modellen nach Schnittserien zu studieren.
Anhang. Milchdrüsen.
Die Milchdrüsen, ein Konvolut tubulo-alveolärer zusammengesetzter Drüsen, bestehen bei Kindern beiderlei Geschlechts vorzugsweise aus Bindegewebe, welches die verästelten, an ihren Enden kolbig angeschwollenen Drüsenausführungsgänge einschließt. Endstücke fehlen. Ebenso verhält sich die Brustdrüse des erwachsenen Mannes.
Beim erwachsenen Weibe sind die Milchdrüsen bis zum Eintritte der Schwangerschaft scheibenförmige Körper, die vorwiegend aus Bindegewebe und aus den Drüsenausführungsgängen bestehen. Endstücke sind nur in beschränkter Anzahl an den feinsten Enden der Ausführungsgänge vorhanden.
Zur Zeit der Schwangerschaft und des Stillens bestehen die Milchdrüsen aus 15-20 Drüsen, welche durch lockeres, fettzellenhaltiges Bindegewebe zu einem gemeinschaftlichen Körper verbunden werden. Jede dieser Drüsen hat einen eigenen, auf der Brustwarze mündenden Ausführungsgang, der kurz vor seiner Mündung mit einer ansehnlichen, spindelförmigen Erweiterung, dem Milchsäckchen (Sinus lactiferus), versehen ist und durch baumförmige Verästelungen mit den Endstücken zusammenhängt. Letztere bilden, dicht beieinander liegend, durch Bindegewebe umfaßte, kleine Läppchen.
Was den feineren Bau betrifft, so bestehen die Ausführungsgänge aus einem zylindrischen Epithel, dem nach außen eine Membrana propria und meist zirkulär verlaufende Bindegewebsbündel folgen. Die Endstücke verhalten sich verschieden zur Zeit der Schwangerschaft und zur Zeit der Laktation. In der Schwangerschaft sind die Endstücke mit einem einfachen, kubischen oder etwas abgeplatteten Epithel ausgekleidet, das vom 7.-8. Monat an Sekret- und Fettropfen enthält; ihr Lumen enthält weiße Blutzellen, die aus dem unterliegenden interstitiellen Bindegewebe durch das Epithel eingewandert sind. Ein Teil dieser Leukozyten zerfällt (ihr Kern ist gelappt, oft in mehrere Stücke geteilt), ein anderer Teil nimmt von den Drüsenzellen geliefertes Fett, entweder gelöst oder (durch Phagozytose) in Tropfenform auf und wächst zu ansehnlichen Körpern, den Kolostrumkörperchen heran (Fig. 360). Korbzellen (S. 85) und eine zarte Membrana propria trennen die Endstücke vom interstitiellen Bindegewebe, das nicht nur reich an Lymphozyten ist, sondern auch viele eosinophile Zellen (S. 95) enthält.
Nach der Geburt sind die Drüsenzellen größer, mit färbbaren Körnchen (Vorstufen des Sekrets?) und Fettropfen gefüllt, welch letztere meist an der dem Drüsenlumen zugekehrten Seite der Zellen liegen (Fig. 358) und oft größer als die Zellkerne sind.
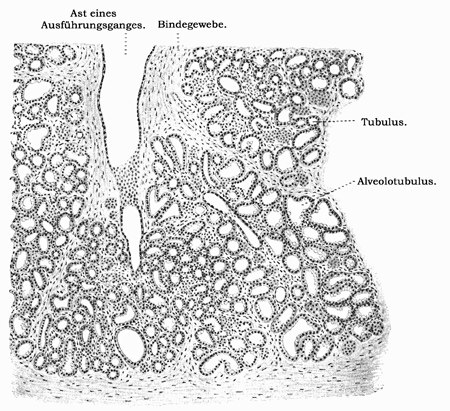
Fig. 357.
Stück eines Schnittes durch die Milchdrüse einer stillenden Frau. 50mal vergrößert. Technik Nr. 177, S. 452.
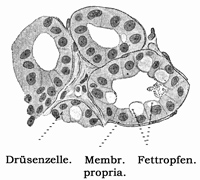
Fig. 358.
Aus einem Schnitt durch eine Milchdrüse einer stillenden Frau. 250mal vergrößert. Technik Nr. 177, S. 452.
Ist das Säugegeschäft ein paar Tage im Gange, dann erscheinen die Drüsenzellen teils platt (sekretleere Zellen), teils als hohe Zylinder, die mit einer zuweilen gelappten Kuppe gegen das Lumen ragen; beide Formen sind durch Übergänge miteinander verbunden und enthalten (die hohen Zellen häufiger) zwei Kerne. Beide Formen enthalten Fettropfen; diese sind nicht wie bei den Talgdrüsen das Produkt einer fettigen Degeneration der Zelle, sondern das Produkt eines Sekretionsaktes des Zytoplasmas, den die Zelle mehrfach wiederholt und bei dem sie nicht zugrunde geht. Kolostrumkörperchen und weiße Blutzellen sind jetzt spärlicher, auch das stark reduzierte interstitielle Bindegewebe enthält nur äußerst wenige Lymphozyten und eosinophile Zellen.
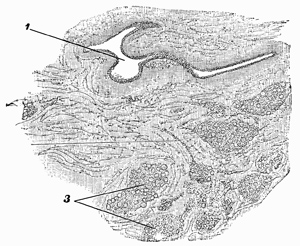
Fig. 359.
Stück eines dicken Schnittes durch die Milchdrüse einer Frau, die vor 2 Jahren zum letztenmal geboren hat. 50mal vergrößert. 1. grober, 2. feiner Ausführungsgang. 3. Drüsenläppchen durch Bindegewebe voneinander getrennt. Technik Nr. 176, S. 452.
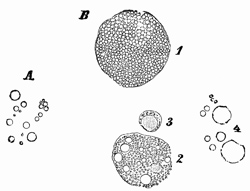
Fig. 360.
A Milchkügelchen aus der Milch einer Stillenden. 560mal vergrößert. Technik Nr. 178. B Elemente des Kolostrum einer Schwangeren. 560mal vergrößert. 1. ungefärbte Fettröpfchen enthaltende Zelle, 2. gefärbte kleine Fettröpfchen enthaltende Zelle, 3. Leukozyt, 4. Milchkügelchen. Technik Nr. 179, S. 452.
Das Drüsenlumen soll außer den Fettropfen („Milchkügelchen“) freie Kerne in geringer Menge, die von den Drüsenzellen ausgestoßen werden, enthalten. Diese Kerne gehen durch Auflösung (S. 71) zugrunde und sollen den Nukleingehalt der Milch bedingen. Kernteilungen durch Mitose kommen wohl in der Mamma Schwangerer, nicht aber in der funktionierenden Milchdrüse vor; man nimmt an, daß diese Kerne hier durch Amitose (S. 68) geliefert werden, es ist aber auch möglich, daß sie degenerierenden, weißen Blutzellen angehören. Auch als Kunstprodukte sind diese freien Kerne verdächtigt worden.
Ist das Säugegeschäft beendet, so findet eine allmähliche Rückbildung statt, die sich zunächst durch reichliche Entwicklung des zwischen den Drüsenläppchen gelegenen Bindegewebes äußert (Fig. 359). Auch weiße Blutzellen treten wieder auf, die sich in ganz gleicher Weise verhalten, wie zur Schwangerschaftsperiode, also Kolostrumkörperchen usw. werden; sie erscheinen in größerer Menge also stets, wenn Milchstauung vorhanden ist. Die Läppchen werden kleiner, die Endstücke beginnen zu schwinden. Bei älteren Personen sind alle Endstücke und Läppchen verschwunden und nur mehr die Ausführungsgänge vorhanden.
Die Haut der Brustwarze und des Warzenhofes besitzt zahlreiche Talg- und Knäueldrüsen — auch einzelne rudimentäre Haare kommen vor — und ist durch starke Pigmentierung — Pigmentkörnchen in den tiefsten Schichten der Epidermis —, durch hohe Papillen und durch glatte Muskelfasern ausgezeichnet, welch letztere teils zirkulär um die Mündungen der Ausführungsgänge, teils senkrecht zur Warzenspitze aufsteigend angeordnet sind. In der Haut des Warzenhofes finden sich die Gland. areolares (Montgomery), die den Milchdrüsen gleichen, sowohl was das Verhalten des Ausführungsganges — es ist ein Sinus lactiferus (S. 447) vorhanden — als den feineren Bau der Endstücke betrifft. Ihre trichterförmige, oft mehreren Drüsen gemeinschaftliche Mündung ist von großen Talgdrüsen umgeben und schließt sich nicht selten an einen feinen Haarbalg oder den Rest eines solchen an. Die Gland. areolares sind als Bindeglieder zwischen Knäuel- und Milchdrüsen zu betrachten, welch letztere Umbildungen von Knäuel- und nicht von Talgdrüsen darstellen.
Die Blutgefäße treten von allen Seiten an die Milchdrüse heran und bilden ein die Tubuli umspinnendes Kapillarnetz. Die Lymphgefäße bilden zwischen und in den Drüsenläppchen kapillare Netze. Auch in der Umgebung der Milchsäckchen und im Warzenhofe finden sich Lymphgefäßnetze. Die Nerven sind zum Teil Gefäßnerven, zum Teil verhalten sie sich wie an den Mundhöhlendrüsen (S. 301).
Die Milch besteht mikroskopisch aus einer klaren Flüssigkeit, in welcher 2-5 µ große Fettröpfchen, die Milchkügelchen suspendiert sind. Außerdem finden sich vereinzelte, Fettröpfchen einschließende Zellen (weiße Blutzellen) in der Milch.
Etwas anders sehen die Elemente der vor und in den ersten Tagen nach der Geburt abgesonderten Milch aus. Hier finden sich außer den Milchkügelchen die Kolostrumkörperchen, einen runden Kern enthaltende, weiße Blutzellen, welche teils kleine, gelblich gefärbte, teils größere, ungefärbte Fettröpfchen, teils nur ungefärbte Fettröpfchen enthalten.
Die „Hexenmilch“, welche sich aus den hohlwerdenden Drüsengängen der Neugeborenen herausdrücken läßt, ist eine dem Kolostrum ähnliche Flüssigkeit.
Technik.
Nr. 166. Schichten der Haut, Knäueldrüsen. Man schneide von der möglichst frischen Haut der Fingerbeere oder des Handtellers oder der Fußsohle Stückchen (von 1-2 cm Seite) mitsamt einer dünnen Schicht des darunter liegenden Fettes aus und lege sie in ca. 30 ccm absoluten Alkohol. Will man das Einrollen vermeiden, so stecke man die Stückchen auf kleine Korktafeln, die Epidermisseite gegen die Korkfläche gekehrt, und lege das Ganze in absoluten Alkohol. Am nächsten Tage nehme man die Stückchen von den Korkplatten und lege sie auf 3-4 Wochen in 50 ccm 90%igen Alkohol, Zelloidineinbettung (S. 23). Man mache feinere und dickere Schnitte, die am besten die Leistchen genau quer treffen. Letztere sind unerläßlich, wenn man die Ausführungsgänge der Knäueldrüsen in ihrer ganzen Länge erhalten will (Fig. 329). Färben mit Hämatoxylin-Eosin (S. 41) oder mit Resorzin-Fuchsin (S. 35) zur Darstellung der elastischen Fasern.
Zur Sichtbarmachung des Stratum granulosum ist Durchfärben mit Boraxkarmin (2-3 Tage) (S. 34) zu empfehlen; die Körnchen dieses Stratum sind dann intensiv rot gefärbt (Fig. 331). Für Epithelfaserung siehe Unna: Eine neue Darstellung der Epithelfasern usw. Monatsschr. f. prakt. Dermatologie 1903.
Nr. 167. Hübsche Präparate der Unterfläche der Epidermis erhält man durch Fixieren von Epidermisfetzen des Fußrückens, die sich an injizierten Präpariersaalleichen häufig ablösen lassen, in 30 ccm absol. Alkohol und 2 Min. langem Färben in Hansenschem Hämatoxylin usw. (S. 32) (Fig. 330).
Nr. 168. Für Nagelpräparate behandle man das letzte Fingerglied von 8-12jährigen Kindern, bei Erwachsenen dasjenige des kleinen Fingers (womöglich von Frauen), nach Nr. 110, S. 289. Entkalken! Die Substanz des Nagels zeigt oft verschieden gefärbte Schichten. An Nägeln von älteren Leichen löst sich oft die Keimschicht von den Leistchen.
Nr. 169. Nagelelemente erhält man, wenn man ein 1-2 mm breites Stückchen des abgeschnittenen Nagels in einem Reagenzgläschen mit ca. 5 ccm konzentrierter Kalilauge über der Flamme bis zu einmaligem Aufwallen erhitzt. Man übertrage dann den Nagel mit einem Tropfen der Lauge auf den Objektträger und schabe etwas von der weich gewordenen Oberfläche desselben ab. Deckglas! Bei starker Vergrößerung findet man Zellen, wie sie Fig. 333 zeigt. Zum Vergleich untersuche man die verhornten Zellen des Stratum corneum, welche man durch leichtes Abschaben der Fingerbeere mit einem steil aufgesetzten Skalpell erhält. Man betrachte die polygonalen Schüppchen in einem Tropfen destillierten Wassers mit starker Vergrößerung.
Nr. 170. Haare lege man in einem Tropfen Kochsalzlösung auf einen Objektträger und betrachte sie mit schwachen und starken Vergrößerungen. Am besten sind weiße Haare und Barthaare. Die Haarkutikula des Menschen ist sehr fein und läßt die dachziegelartige Zeichnung oft nur sehr unvollkommen erkennen; meist sind nur feingewellte Linien sichtbar. Viele tierische Haare zeigen dagegen die Kutikula sehr schön, z. B. Schafwolle.
Nr. 171. Zu Studien über Haar und Haarbalg behandle man Stückchen (von 2-3 cm Seite) der möglichst frischen Kopfhaut nach Nr. 110, S. 289. Längsschnitte des ganzen in der Haut steckenden Haarteiles sind sehr schwer anzufertigen. Man orientiere sich zuerst makroskopisch über die Richtung der Haare. Leichter ist es, Querschnitte zu erzielen; man muß nur darauf achten, genau senkrecht zur Längsrichtung der Haare, nicht parallel der Oberfläche der Haut zu schneiden. Man erhält dann auf einem Schnitte Durchschnitte in verschiedenen Höhen der Haare und Haarbälge. Besonders schön sind die Stellen, an denen die Haarbälge nahe über dem Bulbus durchschnitten sind (Fig. 336).
Nr. 172. Für Haarentwicklung schneide man Stücke (von ca. 2 cm Seite) der Stirnhaut (nicht der behaarten Kopfhaut) eines 5-6 Monate alten, menschlichen Fetus aus, spanne sie auf (Nr. 166), behandle sie nach Nr. 110, S. 289. Durchfärben der Stücke mit Boraxkarmin (S. 34) ist zu empfehlen. Man suche möglichst genau in der Richtung der Haarbälge zu schneiden, was viel leichter gelingt als bei der Kopfhaut Erwachsener. Die Schnitte zeigen alle Entwicklungsstadien.
Nr. 173. Für Haarwechsel liefern Längsschnitte des Nasenrückens 71/2monatiger Feten herrliche Bilder. Behandlung wie Nr. 172. Auch senkrechte Durchschnitte der Kopfhaut Neugeborener liefern oft gute Bilder.
Nr. 174. Talgdrüsen. Man behandle Nasenflügel neugeborener Kinder nach Nr. 110, S. 289. Längs des Nasenrückens geführte Schnitte treffen öfters Talgdrüse und Haarbalg zugleich, nur müssen die Schnitte genau senkrecht geführt sein. Nasenflügel Erwachsener geben wegen der sehr großen, mit weiten Ausführungsgängen versehenen Talgdrüsen keine schönen mikroskopischen Bilder. Kleine Talgdrüsen mit Haarbälgen sieht man mit unbewaffnetem Auge beim Abziehen mazerierter Epidermis von älteren Leichen.
Nr. 175. Blutgefäße der Haut. Man injiziere von der Art. ulnaris (bzw. A. tibial. postic.) aus mit Berliner Blau eine ganze Hand (bzw. einen Fuß) eines Kindes, fixiere sie in 1-2 Liter Müllerscher Flüssigkeit (S. 15), schneide nach einigen Tagen Stücke (von 2-3 cm Seite) des Handtellers (bzw. der Sohle) aus, welche man 2-4 Wochen in ca. 100-200 ccm Müllerscher Flüssigkeit fixiert (usw. 6, S. 15). Einbetten in Zelloidin, Paraffin oder Freihandschnitte. Es müssen mindestens 30-40 µ dicke Schnitte angefertigt werden, die man in Alaun- oder Lithionkarmin nachfärbt. Die Papillen sind an solchen Schnitten oft nur an den Kapillarschlingen kenntlich. Dem Ungeübten scheint es, als ob die Schlingen sich bis in die Keimschicht hinein erstreckten.
Nr. 176. Zu Übersichtspräparaten der Milchdrüse fixiere und härte man die Brustwarze und einen Teil (von 3-4 cm Seite) der Drüse in 60-100 ccm absolutem Alkohol. Womöglich nehme man Drüsen von Individuen, die vor nicht zu langer Zeit geboren haben, ferner jungfräuliche Drüsen usw. Weiterbehandeln nach Nr. 110, S. 289.
Nr. 177. Für den feineren Bau der Milchdrüse lege man lebenswarme Stückchen der Milchdrüse (von 3-5 mm Seite) eines trächtigen oder säugenden Tieres in 5 ccm der Chromosmium-Essigsäure (Weiterbehandlung Nr. 12, S. 17). Die sehr feinen Schnitte färbe man mit Saffranin (usw. S. 33). Die Bilder sind wegen der kleinen Drüsenzellen (beim Kaninchen) oft schwer verständlich.
Nr. 178. Elemente der Milch. Man bringe einen Tropfen Kochsalzlösung auf einen reinen Objektträger, fange mit einem auf die Brustwarze einer Stillenden aufgelegten Deckglas einen Tropfen herausgedrückter Milch auf und setze das Deckglas auf die Kochsalzlösung. Starke Vergrößerung (Fig. 360A).
Nr. 179. Elemente des Kolostrum. Man verfahre wie bei Nr. 178 an der Brust einer Schwangeren, vor der Geburt. Man vermeide auf das Deckglas zu drücken. Die Kerne der Kolostrumkörperchen sind selten ohne weiteres deutlich zu sehen; auf Zusatz eines Tropfens Pikrokarmin (S. 47) erscheinen sie als einfache, runde, mattrote Flecke.
X. Sehorgan.
Der Sehapparat setzt sich aus einer größeren Zahl von Einzelgebilden zusammen, von denen der Augapfel (Bulbus oculi) mit dem Sehnerven (N. opticus) den eigentlichen optischen Apparat darstellt, während als notwendige Hilfsapparate Muskeln, Hautfalten (Augenlider) und Drüsen (Tränenorgane) den Gebrauch des Sehorgans ermöglichen und vervollkommnen.
Die erste Anlage des Augapfels, die „primäre Augenblase“, ist eine epitheliale Hohlkugel, welche durch einen Stiel mit dem Gehirn in Verbindung steht, aus dessen Wandung sie hervorgegangen ist. Indem die Hohlkugel von vorn und unten her sich einstülpt, wird aus der primären die sekundäre Augenblase, ein zweiblättriger Becher, der zur Retina wird (das äußere Blatt wird zum Pigmentepithel [S. 456], das innere Blatt zur eigentlichen Retina), während der Stiel sich zum Nervus opticus umgestaltet. Aus dem Umschlagsrand, da wo äußeres und inneres Blatt der sekundären Augenblase ineinander übergehen, entwickeln sich glatte Muskelfasern, der M. sphincter und daneben der M. dilatator pupillae. Diese Muskeln sind demnach ektodermaler Abkunft, im Gegensatz zu den meisten anderen glatten Muskeln, die aus dem Mesoderm stammen. Während Glaskörper und Linse in den Hohlraum des Augenbechers zu liegen kommen, sondert sich das den Becher umgebende Bindegewebe in zwei Schichten, eine äußere, welche die Tunica externa und eine innere, welche die Tunica media des Augapfels liefert.
Der Augapfel.
Die Seheindrücke werden ausschließlich von dem innersten Blatte (Netzhaut, Retina[118]) des Augapfels aufgenommen und durch den N. opticus dem Gehirn zugeleitet, wo die Seheindrücke zu bewußten Empfindungen und zur Auslösung von Reflexen verarbeitet werden. Die Retina ist entwicklungsgeschichtlich und funktionell ein Teil des Nervensystems. Alle anderen Bestandteile des Augapfels stehen im Dienste dieser nervösen Funktion.
Der Form nach ist der Augapfel eine Hohlkugel, die teils geformten, teils flüssigen Inhalt einschließt. Von der Wandung läßt sich zunächst 1. eine innere Schicht (Tunica interna), die Retina loslösen. Sie grenzt unmittelbar an den Inhalt an, dessen geformte Bestandteile Linse und Glaskörper sind, beide glasklar zum Durchtritt der Lichtstrahlen. Mit mannigfachen Sondereinrichtungen versehen ist 2. die Tunica media, deren hinterer Abschnitt (Chorioidea[119], Aderhaut) den allgemeinen, gefäß- und nervenreichen Zustand dieser Schichte bewahrt hat, während die in den vorderen Abschnitten des Augapfels gelegenen Teile, der Strahlenkörper (Corpus ciliare[120]) und die Regenbogenhaut (Iris[121]) durch den besonderen Pigment- und Muskelreichtum zu äußerst komplizierten, den Lichteintritt regulierenden Apparaten geworden sind. 3. Die Tunica externa dient in ihrem größten Abschnitte (Lederhaut, Sklera[122]) als widerstandsfähige Schutzhülle; nur ihr vorderster, vollkommen durchsichtiger Abschnitt, die Hornhaut (Cornea) ist als Eintrittsort für die Lichtstrahlen besonders ausgestaltet.
Tunica interna.
Die durchsichtige, in ganz frischem Zustande durch den Sehpurpur rotgefärbte Netzhaut, Retina, erstreckt sich von der Eintrittsstelle des Sehnerven bis zum Pupillarrande der Iris und läßt in diesem Bereiche drei Zonen unterscheiden: 1. Die Pars optica retinae, das eigentliche Ausbreitungsgebiet des Nervus opticus. Dieser allein lichtempfindende Teil der Netzhaut erstreckt sich, den ganzen Augenhintergrund auskleidend, bis nahe an den Ziliarkörper und hört dort mit einer scharfen, gezackten, makroskopisch schon wahrnehmbaren Linie, der Ora serrata, auf. 2. Die Pars ciliaris retinae, von der Ora serrata bis zum Ziliarrande der Iris reichend. 3. Die Pars iridica retinae, welche die Hinterfläche der Iris vom Ziliarrande bis zum Pupillarrande überzieht. P. ciliaris und iridica werden auch zusammen als Pars caeca bezeichnet.
1. Der Aufbau der Pars optica retinae entspricht in vielen Punkten demjenigen des Gehirns: wir finden mehrere Formen, in bestimmter Weise miteinander verknüpfter Ganglienzellen und ein gliöses Stützgerüst. An die Stelle des in der ersten Entwicklungszeit vorhandenen Ventrikels (s. oben) ist durch die innige Durchdringung von Fortsätzen der äußeren Wand des Augenbechers (Pigmentepithel, Fig. 362) und solchen der inneren Wand (Stäbchen- und Zapfenzellen) eine für die unmittelbare Aufnahme der Seheindrücke wichtige Formation getreten. Durch die Ausbildung einer gliösen Grenzhaut (Membrana limitans externa, Fig. 362) wird der ursprüngliche Ventrikelspalt gegen das innere Retinablatt abgegrenzt, von dem nur die Fortsätze der Stäbchen und Zapfenzellen in das Gebiet des Ventrikelhohlraums hineinragen. Eine ähnliche Grenzhaut (Membrana limitans interna) grenzt das innere Netzhautblatt gegen den Glaskörper ab.
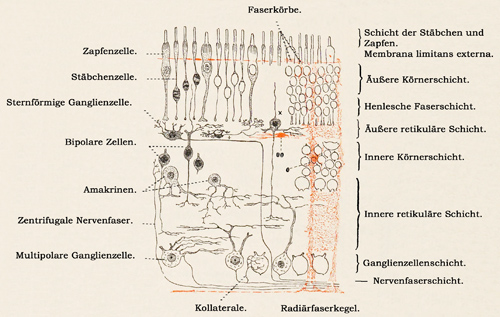
Fig. 361.
Schema der menschlichen Netzhaut. Stützsubstanz (Glia) rot. 0 Kernhaltiger Teil der Radiärfasern.
a) Das nervöse Gewebe der Retina. Die am Sehakt beteiligten Nervenzellen sind nach den im Zentralnervensystem geltenden Regeln miteinander verbunden. Wir unterscheiden 1. solche Neurone (s. S. 134), die in unmittelbarer Aufeinanderfolge den Lichteindruck weiterleiten; von diesen sind in vollem Umfange zwei in die Retina eingelagert, vom dritten liegt der kernhaltige Teil in der Retina, während der Neurit durch den N. opticus dem Gehirn zustrebt, 2. solche Neurone, die den Assoziationszellen des Zentralnervensystems ähnlich, zahlreiche Neuronengebiete der ersten Art untereinander verknüpfen.
Die Aufnahme der Seheindrücke ist die Aufgabe der Neuroepithelschicht (Fig. 362). Der Lage nach könnte man die Zellen dieser Schicht mit den Ependymzellen des Zentralnervensystems vergleichen.
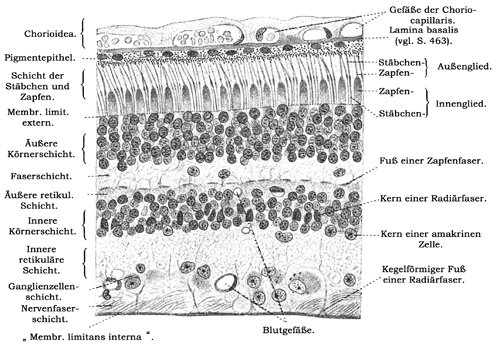
Fig. 362.
Senkrechter Schnitt der Retina des Menschen. 360mal vergrößert. Technik Nr. 181, S. 481.
Die Neuroepithelschicht besteht aus zweierlei Elementen: den Stäbchensehzellen und den Zapfensehzellen, die beide dadurch ausgezeichnet sind, daß ihr Kern in der unteren Hälfte der Zelle gelegen ist, während der obere, kernlose Abschnitt durch die gliöse Membrana limitans externa (s. unten) von dem unteren Teile scharf abgegrenzt wird. Dadurch wird das Bild verschiedener Schichten hervorgerufen; die innere, aus den kernhaltigen Teilen der Sehzellen bestehende Schicht ist als äußere Körnerschicht, die äußere, kernlose Abteilung als Schicht der Stäbchen und Zapfen bekannt. Zwischen beiden liegt die Membrana limitans.
1. Stäbchensehzellen. Die äußeren Hälften derselben sind die Stäbchen, langgestreckte Zylinder (60 µ lang, 2 µ dick), welche aus einem homogenen Außengliede und einem feinkörnigen Innengliede bestehen. Das Gebiet der Außenglieder ist der ausschließliche Sitz des Sehpurpurs, eines im Lichte sehr schnell bleichenden Farbstoffes. Das Innenglied besitzt in seinem äußeren Ende einen ellipsoiden, faserigen Körper, den Fadenapparat. Die inneren Hälften der Stäbchenzellen werden Stäbchenfasern genannt; sie sind sehr feine Fäden, welche mit einer kernhaltigen Anschwellung versehen sind. Der Kern ist durch 1-3 helle Querbänder ausgezeichnet. Das basale Ende der Zelle ist zu einer kleinen, fortsatzfreien Keule aufgetrieben (Fig. 361).
2. Zapfensehzellen. Die äußeren Hälften derselben, die Zapfen, bestehen gleichfalls aus einem Außengliede und einem Innengliede. Die Außenglieder sind konisch und kürzer als diejenigen der Stäbchen. Die Innenglieder sind dick, bauchig aufgetrieben und besitzen die Fähigkeit, sich bei Belichtung ausgiebig zu kontrahieren; die Gestalt der Zapfen ist somit eine flaschenförmige. Auch das Innenglied der Zapfen enthält einen Fadenapparat. Die inneren Hälften der Zapfensehzellen sind die Zapfenfasern; diese sind breit und sitzen mit kegelförmig verbreitertem Fuße auf der äußeren retikulären Schicht. Die kernhaltige Anschwellung liegt gewöhnlich dicht nach innen von der Membrana limitans.
Die Zahl der Stäbchen ist eine viel größere als die der Zapfen. Letztere stehen in regelmäßigen Abständen, so daß immer je drei bis vier Stäbchen zwischen je zwei Zapfen liegen (Fig. 362). Doch ist die Verteilung der beiden Sehzellenformen sowohl in der Tierreihe, wie in den einzelnen Abschnitten der Netzhaut des Menschen verschieden: Manche (besonders Nacht-) Tiere, wie Fledermäuse, Eulen u. a. haben nur Stäbchenzellen, andere (Schlangen) nur Zapfenzellen; in der Fovea centralis (s. unten) der menschlichen Netzhaut, der Stelle des schärfsten Sehens, liegen ausschließlich Zapfenzellen.
Die der äußeren retikulären Schicht aufsitzenden Basalteile der Sehzellen sind meist deutlich als eine besondere, radiär gestreifte Schicht zu erkennen (Fig. 362); diese „Henlesche Faserschicht“ ist im Bereich der Macula lutea (s. unten) von besonderer Breite und nimmt allmählich — oft sehr ungleichmäßig — gegen die Ora serrata ab.
Das Pigmentepithel schließt außen an die Neuroepithelschicht an und besteht aus einer einfachen Lage sechsseitiger Zellen, welche an ihrer äußeren, der Chorioidea zugewendeten Fläche pigmentärmer sind (hier liegt auch der Kern), während der innere Abschnitt derselben zahlreiche, stabförmige, 1-5 µ lange, braune Pigmentkörnchen („Fuszin“) enthält; von diesem Teil ziehen zahlreiche, feine Fortsätze zwischen die Stäbchen und Zapfen. Bei Albinos und am Tapetum (s. S. 463) ist das Epithel pigmentfrei. Bei vielen Tieren (besonders Amphibien und Fischen) wandert das Pigment bei intensiver Netzhautbelichtung in der Umgebung der Stäbchenglieder bis zur Membr. lim. ext. vor, um beim Aufenthalt im Dunkeln diese Region wieder zu verlassen.
Die Zellen der Neuroepithelschicht bilden das I. Neuron des Sehleitungsapparates und stehen im Gebiete der sogenannten äußeren retikulären Schichte mit dem II. Neuron in Verbindung. Die kernhaltigen Teile dieses Neurons liegen mit anderen Zellformen vereinigt in der sogenannten inneren Körnerschicht; die Golgimethode charakterisiert hier in großen Mengen bipolare Ganglienzellen, deren peripherer Fortsatz in der äußeren retikulären Schicht (Fig. 361) mit den Neuroepithelzellen in Verbindung steht.
Dort teilt er sich gabelig, breitet sich der Fläche nach aus und geht, in feinste Fibrillen zerfallend, in ein Fasergewirr über, das durch die Verfilzung mit Fortsätzen benachbarter Ganglienzellen gebildet wird. Alle bipolaren Ganglienzellen schicken einen Fortsatz zwischen die Sehzellen in die Höhe, der nahe der Membrana limitans externa mit einer kleinen Verdickung endet (Fig. 361 ×).
Der zentrale Fortsatz (Neurit) der Bipolaren reicht in die innere retikuläre Schicht (Fig. 361) und löst sich dort in feine Äste auf. Hier stehen die Neuriten der Bipolaren mit den zahlreichen Dendriten des III. Neurons in Verbindung, dessen Zellen in der Ganglienzellenschicht liegen.
Diese, auch Ganglion nervi optici genannt, besteht aus einer einfachen Lage großer, multipolarer, mit Nißlschen Körpern (S. 137) versehener Ganglienzellen, welche einen meist ungeteilten Fortsatz (Neurit) zentralwärts gegen die Nervenfaserschicht, einen oder mehrere, verästelte Fortsätze (Dendriten) peripheriewärts gegen die innere retikuläre Schicht entsenden; dort bilden die Fortsätze sich teilend feine, zum Teil der Fläche nach in verschiedenen Höhen ausgebreitete Verästelungen, welche mit den Fortsätzen der Bipolaren und anderer Ganglienzellen (s. unten) ein dichtes Gewirr herstellen (Fig. 361).
Einzelne dieser Zellen zeichnen sich durch ihre Größe aus; solche Riesenganglienzellen liegen in ziemlich regelmäßigen Abständen; auch durch eine kurze Brücke miteinander verbundene „Zwillingsganglienzellen“ sind in dieser Schicht gefunden worden; nur eine dieser Zellen besitzt dann einen Neuriten. Einzelne Neuriten besitzen auch Kollateralen, die rückläufig mit ihren Verästelungen benachbarte Ganglienzellen umspinnen (Fig. 361).
Die Gesamtheit der Neuriten dieser großen Ganglienzellen bildet mit anderen (zentrifugalen) Nervenfasern zusammen an der inneren Oberfläche der Retina eine selbständige, sogenannte Nervenfaserschichte (Fig. 362); hier verlaufen, zu Bündeln angeordnet, die marklosen Neuriten der großen Ganglienzellen. Von allen Teilen der Netzhaut nach der Austrittsstelle des N. opticus zusammenströmend, sind sie hier in dicker Schicht angeordnet. Die radiäre Anordnung der Fasern erleidet eine Störung im Bereiche der Macula lutea (S. 459). Die Achsenzylinder gehören zwar zum größten Teile zu den in der Retina gelegenen Ganglienzellen; zum andern Teile aber sind sie Fortsätze von Ganglienzellen des Gehirns, zentrifugale Fasern (Fig. 361), welche um die großen Ganglienzellen der inneren Körnerschicht (s. oben) frei verästelt enden.
Letztere gehören damit zu regulatorischen Einrichtungen, denen auch gewisse Ganglienzellen der Retina zuzurechnen sind. Dies sind vor allem die sogenannten amakrinen[123] Zellen, die, in der innersten Lage der inneren Körnerschichte gelegen, verästelte Fortsätze in die innere retikuläre Schichte senden. Dort haben sie Beziehungen zu dem Fasergeflecht, das das II. mit dem III. Neuron der Sehbahn verknüpft.
b) Die gliösen Anteile der Retina tragen durch ihre charakteristische Anordnung sehr wesentlich zu dem typischen Aufbau bei; in Golgipräparaten lassen sich aus dem plasmodialen Gliagefüge folgende „Zellgebiete“ hervorheben: 1. die Radiärfasern (Müllersche Stützfasern), langgestreckte Zellen, welche von der Innenfläche der Retina durch sämtliche Schichten bis zu den Stäbchen und Zapfen hinausreichen. Ihr inneres Ende ist durch einen kegelförmigen Fuß, den Radiärfaserkegel, charakterisiert; indem die verdickten Basen dieser Kegel sich dicht aneinander fügen, täuschen sie eine an der inneren Oberfläche der Retina liegende Membran, die sogenannte Membrana limitans interna vor. Von der Spitze des Kegels an, sich immer mehr verschmälernd, ziehen die Stützfasern durch die innere retikuläre Schicht in die innere Körnerschicht; hier sind sie mit einem Kerne versehen; von da ziehen die Fasern durch äußere retikuläre und äußere Körnerschicht bis zur Membrana limitans (externa), mit welcher sie sich verbinden. Während ihres ganzen Verlaufes geben die Radiärfasern seitliche Fortsätze und Blätter zur Stütze der nervösen Elemente, besonders reichlich in der äußeren Körnerschicht (Fig. 363) ab. Außer diesen radiären Stützzellen kommen in der äußeren retikulären Schicht 2. konzentrische Stützzellen (Fig. 361, 00) vor; sie sind der Fläche nach ausgebreitete, mit langen Ausläufern versehene Zellen, die teils kernhaltig, teils kernlos sind; in der Nähe des Sehnerveneintritts, in der Nervenfaserschicht sowie im Ganglion nervi optici nimmt das Gliaplasmodium vielfach die Form an, die vom zentralen Nervensystem her bekannt ist (s. S. 140). Von der Oberfläche der Membrana limitans externa erheben sich noch feine Fasern, welche hürdenförmig die Basen der Stäbchen und Zapfen umfassen, die sogenannten Faserkörbe (Fig. 363 und 361).
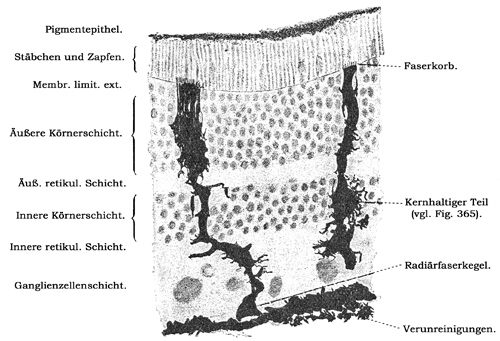
Fig. 363.
Stück eines senkrechten Schnittes der Netzhaut des Menschen. An dem dicken Schnitt sind nicht sämtliche Schichten der Netzhaut zu unterscheiden: auch die feinen Fortsätze der Radiärfasern decken sich vielfach und täuschen, besonders in der äußeren Körnerschicht, eine kompakte Masse vor. 360mal vergrößert. Technik Nr. 182, S. 482.
In allen Übersichtspräparaten kann man von den Beziehungen der einzelnen Zellen untereinander nicht viel erkennen; ich gebe deshalb hierunter noch eine kurze Charakterisierung des Schichtenbaues in der Reihenfolge von außen nach innen.
Äußeres Blatt des Augenbechers. 1. Pigmentepithel.
2. Stäbchen und Zapfen.
Inneres Blatt des Augenbechers. Neuroepithelschicht.
3. Membrana lim. externa (Gliös).
4. Äußere Körnerschicht (Kerne der Stäbchen- und Zapfenzellen, Stützfasern).
5. Äußere retikuläre Schicht (Fortsätze der Sehzellen und der Bipolaren, Stützfasern). Gehirnschicht.
6. Innere Körnerschicht (Kerne der Bipolaren und der amakrinen Zellen, Gliakerne der Radiärfasern).
7. Innere retikuläre Schicht (Neuriten der Bipolaren, Dendriten der Ganglienzellen, Fortsätze der amakrinen Zellen, Gliafasern).
8. Ganglienzellenschicht (große Ganglienzellen, Gliafasern).
9. Nervenfaserschicht (zentripetale und weniger zentrifugale Nervenfasern).
10. Membr. limitans interna (Radiärfaserkegel der Glia).
Der vorstehend geschilderte Bau der Retina erleidet an der Macula lutea und in der Fovea centralis, sowie an der Ora serrata bemerkenswerte Modifikationen.
Macula lutea und Fovea centralis. Im Bereiche der Makula erfahren die Retinaschichten folgende Veränderungen: Feine Optikusfasern, das sogenannte papillo-makuläre Bündel, verlaufen von der Eintrittsstelle des Sehnerven gerade zum nächstgelegenen, medialen Teile der Makula; die über und unter diesen Fasern aus der Eintrittsstelle kommenden, dickeren Nervenfasern verlaufen dagegen in aufwärts bzw. abwärts konvexem Bogen und vereinigen sich am lateralen Rande der Makula. Die Ganglienzellenschicht wird bedeutend dicker, indem die hier bipolaren Ganglienzellen statt in einfacher Lage in vielen (bis 9) Lagen übereinander angeordnet sind; auch die innere Körnerschicht ist durch Vermehrung ihrer Elemente fast um das Doppelte verbreitert. Die innere und äußere retikuläre Schicht erleiden keine wesentlichen Veränderungen. Die Neuroepithelschicht wird einzig durch hier etwas schmälere Zapfensehzellen hergestellt. Schon am Rande der Makula vermindert sich die Zahl der Stäbchensehzellen, in der Makula selbst fehlen sie vollkommen; infolgedessen sind die Zapfenfasern in großer Ausdehnung sichtbar; sie bilden hier allein die Henlesche Faserschicht. Die Zapfenkerne liegen wegen ihrer großen Menge in mehreren Lagen übereinander. Die Radiärfasern stehen nicht mehr senkrecht zur Dicke der Retina, sondern schräg gegen die Fovea gewendet.
Gegen die in der Mitte der Macula lutea gelegene Fovea centralis verdünnen sich allmählich die Retinaschichten und hören zum Teil gänzlich auf. Zuerst verschwindet bis auf einige feine Fasern die Nervenfaserschicht, dann fließen die Gehirnschichten zu einer dünnen Lage zusammen. Im Zentrum der Fovea („Fundus foveae“) ist nur die Neuroepithelschicht (Zapfenzellen) vorhanden. Der Abfall der Schichten ist individuell verschieden, so daß sich die Form der Fovea bald flach, bald tiefer mit steilen Rändern zeigt (Fig. 364).
Ein diffuser, gelber, in Alkohol löslicher Farbstoff durchtränkt Makula und Fovea.
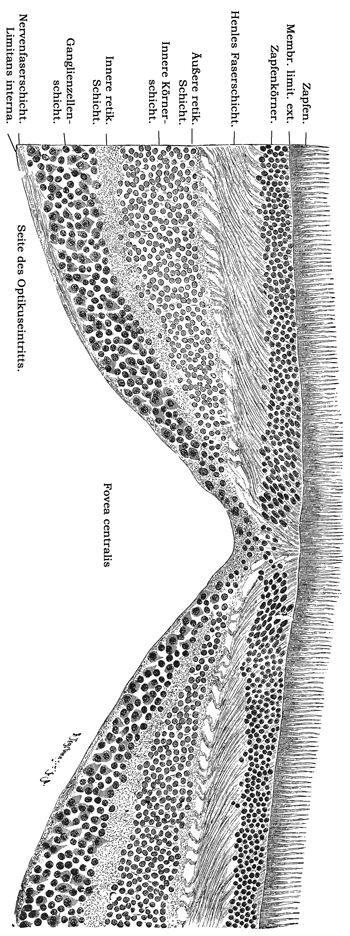
Fig. 364.
Horizontalschnitt durch die Macula lutea und die Fovea centralis eines 60 Jahre alten Mannes. Nach einem Präparat von Prof. Haab, gezeichnet von Schaper. 135mal vergrößert.
Die Nervenfaserschicht ist, wie überhaupt alle Schichten auf der Seite des Optikuseintritts dicker als auf der entgegengesetzten Seite, dort sieht man die Nervenfasern quer durchschnitten als feine Punkte. Der Schnitt geht nicht genau durch die Mitte der Fovea, denn dort sind nur Zapfensehzellen, nicht aber, wie hier, noch Reste der konfluierenden, inneren Körner- und Ganglienzellenschicht vorhanden.
Im Gebiete der Ora serrata erfolgt sehr rasch eine Abnahme der Retinaschichten. Optikusfasern und Ganglienzellen sind schon vor der Ora verschwunden. Von den Sehzellen verschwinden zuerst die Stäbchensehzellen; die Zapfensehzellen sind noch erhalten, scheinen aber der Außenglieder zu entbehren. Dann verliert sich die äußere retikuläre Schicht, so daß äußere und innere Körnerschicht konfluieren, endlich hört die innere retikuläre Schicht auf. Die Ora serrata ist häufig der Sitz von Lücken, die zuerst in der äußeren Körnerschicht auftreten und sich auch weiter auf zentrale Schichten ausdehnen können (Fig. 365). Stark entwickelt sind die Radiärfasern, die allmählich in eine einfache Lage langgestreckter Zylinderzellen übergehen und damit
2. die Pars ciliaris retinae darstellen (Fig. 365, 11). Diese Zellen entsenden von ihrer inneren Oberfläche Fasern, die in horizontaler Richtung eng aneinander gelagert das Bild einer Glashaut erzeugen; weiter vorn gegen die Linse zu bilden diese Fasern die Zonula ciliaris (S. 469). Die äußere Oberfläche dieser Zylinderzellen stößt an pigmentierte Zellen, die eine Fortsetzung des Pigmentepithels sind.
3. Pars iridica retinae s. Pigmentschicht der Iris (S. 466).
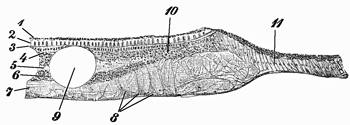
Fig. 365.
Meridionalschnitt der Ora serrata und des angrenzenden Teiles der Pars ciliar. retinae einer 78 Jahre alten Frau. 70mal vergrößert. 1. Pigmentepithel, 2. Zapfen, der Außenglieder entbehrend, 3. Membr. limit. extern., 4. äußere Körnerschicht, 5. äußere retikuläre Schicht, 6. innere Körnerschicht, 7. innere retikuläre Schicht, 8. Radiärfasern, 9. Lücke in der Netzhaut, bei 10. konfluieren äußere und innere Körnerschicht und gehen in 11. die Zellen der Pars ciliar. retinae über. Technik Nr. 184, S. 482.
Nervus opticus.
Der Sehnerv ist nach seiner Entstehungsweise (s. oben) ein Teil des zentralen Nervensystems; er folgt auch in seinem Aufbau dem Bilde, das die weiße Substanz der Zentralorgane darbietet. Die markhaltigen Nervenfasern verlaufen, wie die zentralen Nervenfasern (s. S. 144), in einem — im Golgibild „Langstrahler“ (s. S. 140) bergenden — Gliaplasmodium. Die Markhülle beginnt erst während des Austritts aus der Wand des Bulbus oculi, so daß der Gesamtquerschnitt der Nervenfasern sich hierbei beträchtlich vergrößert.
Durch bindegewebige Hüllen, die als Fortsetzungen der Hüllen des Gehirns (s. S. 250) zu betrachten sind, wird der Sehnerv von der Umgebung abgegrenzt. Die Pia umgibt den Nerven unmittelbar und teilt ihn durch eindringende, gefäßführende Bindegewebsblätter in Bündel ein (Fig. 366). Diese Blätter stehen durch quere Bälkchen miteinander in Verbindung, woraus ein queres Gitterwerk resultiert. Der Pia folgt nach außen die sehr zarte Arachnoidealscheide, welche zahlreiche, verästelte Bindegewebsbälkchen nach einwärts zur Piascheide sendet, während die Verbindung mit der Duralscheide nur durch wenige, straffe Fasern hergestellt wird. Zu äußerst befindet sich die aus derben, außen mehr longitudinalen, innen mehr zirkulären Bindegewebsbündeln und vielen elastischen Fasern bestehende Duralscheide (Fig. 366).
An der Eintrittsstelle des Sehnerven in den Bulbus geht die Duralscheide in die Sklera über, die Arachnoidealscheide löst sich an ihrem vorderen Ende in Fasern auf, so daß der nach außen von der Arachnoidealscheide gelegene Subduralraum mit dem nach innen von der Arachnoidealscheide gelegenen Subarachnoidealraum kommuniziert. Die Piascheide verschmilzt mit der Sklera, die dort von vielen Löchern für die durchtretenden Nervenfasern durchbohrt ist; diese an elastischen Fasern sehr reiche Stelle heißt Lamina cribrosa. Auch die Chorioidea beteiligt sich, wenn auch in geringerem Maße, an der Bildung der Lamina cribrosa. Die Nervenfasern breiten sich radienförmig an der Innenfläche der Netzhaut aus. Die Umbiegungsstelle bildet um die aus der Achse des Sehnerven eintretenden Blutgefäße einen ringförmigen Wall („Papilla nervi optici“), der gegen die Peripherie sich allmählich abflacht (Fig. 366). Die von der Papille umgebene, sehr wechselnd große, trichterförmige Vertiefung heißt die physiologische Exkavation des Sehnerven.
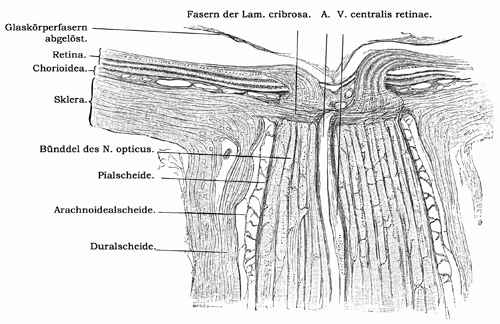
Fig. 366.
Längsschnitt der Eintrittsstelle des N. opticus vom Menschen. 15mal vergr. Oberhalb der Lam. cribr. ist die Verschmälerung des N. opticus sichtbar; Arteria und Vena centralis sind größtenteils der Länge nach, weiter nach oben aber mehrfach der Quere nach durchschnitten. Technik Nr. 184, S. 482.
In der distalen Hälfte des N. opticus sind in dessen Achse die Arteria und die Vena centralis retinae gelegen; das diese Gefäße umhüllende Bindegewebe steht in vielfacher Verbindung mit der Pialscheide sowohl, wie mit der Lamina cribrosa.
Tunica media.
Die Chorioidea ist durch ihren großen Reichtum an Blutgefäßen ausgezeichnet, welche in zwei Schichten geordnet sind. Die oberflächliche, nach innen von der Lamina suprachorioidea befindliche Lage, die Lamina vasculosa (Schicht der gröberen Gefäße) (Fig. 367), enthält die venösen Gefäße, die, von Lymphscheiden umgeben, in eine aus feinen, elastischen Fasernetzen und zahlreichen, verästelten Pigmentzellen bestehende Grundsubstanz (Stroma) eingebettet sind. Das Stroma enthält außerdem als Begleiter der größeren Arterien fibrilläres Bindegewebe, glatte Muskelfasern und platte, nicht pigmentierte Zellen, die zu feinen Häutchen („Endothelhäutchen“) verbunden sind. Die tiefere Schicht, Lamina choriocapillaris, wird durch ein engmaschiges Netz weiter Kapillaren, zwischen denen keinerlei geformte Elemente gelegen sind, gebildet und ist als Ernährungsorgan für die tieferen Netzhautschichten besonders wichtig. Zwischen beiden Gefäßschichten liegt die meist pigmentlose, aus feinen, elastischen Fasernetzen bestehende Grenzschicht (= Lam. elastic. chorioideae) der Grundsubstanz.
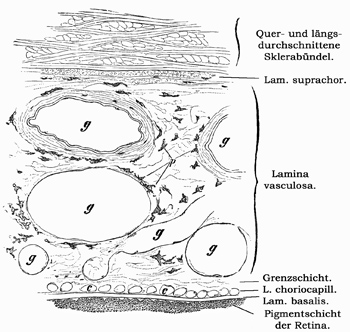
Fig. 367.
Senkrechter Schnitt durch einen Teil der Sklera und die ganze Chorioidea des Menschen. 100mal vergr. g Gröbere Gefäße, p Pigmentzellen, c Querschnitte von Kapillaren. Technik Nr. 184, S. 482.
An ihre Stelle treten bei Wiederkäuern und Pferden wellig verlaufende Bindegewebsbündel, welche dem Auge dieser Tiere einen metallischen Glanz verleihen. Diese glänzende Haut ist unter dem Namen Tapetum fibrosum bekannt. Das gleichfalls irisierende Tapetum cellulosum der Raubtiere wird hingegen durch mehrere Lagen platter Zellen, die zahlreiche, feine Kristalle enthalten, hergestellt.
An die Membrana choriocapillaris schließt sich ein dichtes Netz feiner elastischer Fasern und dann die Lamina basalis (Glashaut), eine strukturlose, bis 2 µ dicke Lamelle, welche auf ihrer äußeren Oberfläche mit einer feinen, gitterförmigen Zeichnung versehen ist. Eine auf der inneren Oberfläche bemerkbare, polygonale Felderung wird durch Abdrücke des mit ihr innig verbundenen Retinalpigments hervorgerufen. Die Lamina basalis soll ein Mischprodukt von Chorioidea und Retina sein und gibt keine elastische Reaktion.
Das Corpus ciliare enthält mehrere Muskelsysteme, die durch ihre Beziehungen zur Linse (s. unten) die Gestalt derselben und damit die Einstellung auf nahe und ferne Objekte (Akkommodation) regulieren können.
Die Processus ciliares sind 70-80 meridional gestellte Falten, welche von der Ora serrata (S. 453) an, niedrig beginnend, sich allmählich bis zu einer Höhe von 1 mm erheben und nahe dem Linsenrande, plötzlich abfallend, enden. Jeder Ziliarfortsatz besteht aus fibrillärem Bindegewebe, das elastische Fasern und zahlreiche Blutgefäße enthält und einwärts durch eine Fortsetzung der Lam. basalis, die hier durch sich kreuzende Fältchen gekennzeichnet ist, von der Pars ciliaris retinae (S. 461) abgegrenzt wird.
Die zahlreichen Blutgefäße der Ziliarfortsätze liegen sehr nahe unter der inneren Oberfläche, die innere Lage der Epithelzellen enthält oft feine, körnige und vakuoläre Einschlüsse; bei Abfluß des vorderen Kammerwassers kommt Ersatz aus dem Gebiete der Ziliarfortsätze. Aus allen diesen und anderen Erfahrungen wird auf die Anteilnahme dieser Gebilde an der Produktion des Kammerwassers geschlossen.
Der Musculus ciliaris ist ein ca. 3 mm breiter, vorn 0,8 mm dicker Ring. Seine glatten Elemente verlaufen nach drei verschiedenen Richtungen. Wir unterscheiden: 1. Meridionale Fasern; es sind dies die der Sklera zunächst gelegenen, mit elastischen Fasern untermengten, zahlreichen Muskelbündel, welche bis zum glatten Teile der Chorioidea reichen; sie sind unter dem Namen Tensor chorioidea bekannt; diese Bündel gehen mit einer kurzen, elastische Fasern enthaltenden Sehne vorn in die Descemetsche Haut der Kornea (s. unten, S. 472), hinten in die Lamina elastica chorioideae über. 2. Radiäre Fasern, den meridionalen zunächst gelegene Bündel, welche von außen nach innen eine immer mehr radiär (zum Mittelpunkte des Bulbus orientierte) Richtung annehmen und hinten im Bereiche des Ziliarkörpers, in zirkuläre Richtung umbiegen. 3. Zirkuläre (äquatoriale) Fasern (Müller), deren Menge individuell sehr wechselt (Fig. 368). Die beiden zuletzt genannten Anteile bewirken durch ihre Beziehungen zur Linse (s. S. 469) teils Abflachung, teils Vorwölbung der Linsenoberfläche, sind also bei der Akkommodation stark beteiligt.
Die Regenbogenhaut, Iris, wirkt wie eine photographische Blende und besteht aus einem, in vordere Grenzschicht und in Gefäßschicht gesonderten, Stroma, das vorn nur unvollkommen von einer Fortsetzung des Hornhautendothels, hinten von einer modifizierten Fortsetzung der Retina überzogen wird. Wir unterscheiden in der Iris folgende Lagen:
1. Das „Endothel“ der vorderen Irisfläche; es besteht, wie das der Hornhaut, aus einer einfachen Lage abgeplatteter, polygonaler Zellen, die aber nicht überall dicht abschließen.
2. Die vordere Grenzschicht (retikuläre Schicht); sie besteht aus 3-4 Lagen von Netzen, welche durch sternförmige, zum Teil pigmentierte Bindesubstanzzellen gebildet werden. Dieses dem Retikulum des adenoiden Gewebes ähnliche Netzwerk geht an seiner hinteren Fläche allmählich über in
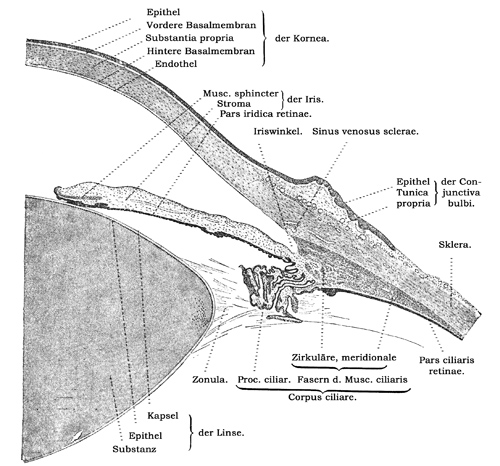
Fig. 368.
Meridionalschnitt durch den Iriswinkel (s. S. 466) des Menschen. 15mal vergrößert. Die radiären Fasern des M. ciliaris sind bei dieser Vergrößerung nicht zu unterscheiden. Technik Nr. 184, S. 482.
3. die Gefäßschicht der Iris; sie besteht aus einem Stroma: lockeren, feinen Bindegewebsbündeln, die nur in ihren hinteren Schichten sehr spärliche, radiäre, elastische Fasern enthalten, und einem von sternförmigen Zellen gebildeten Netze, dessen Maschen die Form länglicher, radiär gestellter Polygone haben; in diesen Zellen enthaltenes Pigment bestimmt die dunkleren Töne der Augenfarben. Fehlt in den Bindegewebszellen Pigment, so bewirkt das durchschimmernde Pigmentepithel der hintersten (retinalen) Irisschichte einen blauen Iriston. Das Stroma enthält zahlreiche, radiär (zur Pupille) verlaufende Gefäße, die eine sehr dicke, bindegewebige Tunica externa, aber beim Menschen keine Muskulatur und auch keine elastischen Fasern haben. In der Gefäßschicht sind ferner glatte Muskelfasern gelegen, und zwar a) ringförmig um den Pupillarrand der Iris angeordnete Faserbündel: der bis zu 1 mm breite Musc. sphincter pupillae, an dessen Faszie sich viele Ausläufer des Stromazellennetzes ansetzen, und b) bei Tieren (Kaninchen) von diesem in radiärer Richtung ausstrahlende spärliche Fasern, welche keine zusammenhängende Schicht bilden und sich peripheriewärts zwischen den Fasern des Musc. dilatator verlieren; beim Menschen sind diese Fasern nur in Spuren vorhanden.
An die Rückfläche der Gefäßschicht schließt sich an der Musculus dilatator pupillae; er erstreckt sich vom Ziliarrande der Iris bis nahe an den Pupillarrand und verbindet sich hier mit dem zwischen den Sphinkterbündeln, dort mit dem zwischen den Ziliarmuskelbündeln befindlichen Bindegewebe. Er besteht aus einer zusammenhängenden Schicht spindelförmiger, glatter Muskelfasern, deren jede einen vorderen, kernlosen, kontraktilen und einen hinteren, kernhaltigen, pigmentierten Abschnitt zeigt; der vordere Abschnitt ist besonders auf Radiärschnitten der Iris als ein heller 2-5 µ dicker Streifen deutlich zu sehen und ist unter dem Namen
4. die hintere Grenzschicht (Bruchsche Membran, Henlesche Spindelzellschicht) bekannt. Der hintere pigmentierte Teil bildet mit den angrenzenden, gleichfalls pigmentierten, polygonalen Zellen der „Pars iridica retinae“ eine gemeinschaftliche Pigmentmasse:
5. die Pigmentschicht der Iris. Das Pigment fehlt hier nur bei Albinos. Die hintere Fläche der Pigmentschicht wird von einem sehr feinen Häutchen, der Limitans iridis, einer Fortsetzung der Glashaut der Pars ciliaris retinae (S. 461) überzogen.
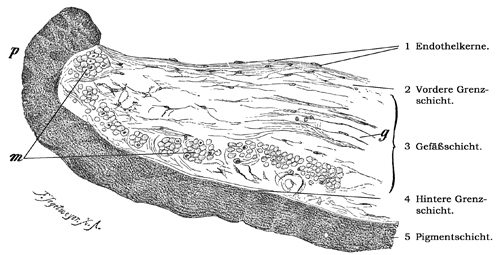
Fig. 369.
Senkrechter Schnitt durch den pupillaren Teil der menschlichen Iris. 100mal vergrößert. Es ist etwa ein Fünftel der ganzen Irisbreite gezeichnet. g Blutgefäß mit dicker Bindegewebsscheide, m Musc. sphincter pupillae, quer durchschnitten, p Pupillarrand der Iris. Technik Nr. 184, S. 482.
Iriswinkel (Kornealfalz). Die Übergangsstelle der Sklera in die Kornea ist insofern von besonderem Interesse, als daselbst Iris, Kornea und Corpus ciliare aneinander stoßen. Der hinterste Abschnitt der Substantia propria corneae (s. S. 471), sowie die hintere Basalmembran stoßen in der Peripherie mit dem Ziliarrande der Iris zusammen; diese Stelle heißt der Iriswinkel (Fig. 368). Hier sendet die Iris gegen die Hinterfläche der hinteren Basalmembran bindegewebige Fortsätze, die Irisfortsätze, die, bei Tieren (Rind, Pferd) mächtig entwickelt, das sogenannte Ligamentum iridis pectinatum darstellen. Beim Menschen sind diese Fortsätze kaum ausgebildet. Mit den Irisfortsätzen vereinigt sich die hintere Basalmembran, indem dieselbe sich in ihrer ganzen Peripherie in Fasern auflöst, die mit den Irisfortsätzen verschmelzen; diese Fasern erhalten noch Verstärkungen von seiten der elastischen Sehnen und des intermuskulären Bindegewebes des Ziliarmuskels, sowie in geringerem Grade Zuwachs von seiten der Sklera. Somit beteiligen sich am Aufbaue der im Iriswinkel ausgespannten Fasern sämtliche dortselbst aufeinander treffenden Gewebe: Kornea, Sklera, Iris und M. ciliaris; das von der Hinterfläche der hinteren Basalmembran auf die Irisoberfläche sich fortsetzende Endothel hüllt die Fasern ein. Die zwischen den Fasern befindlichen Räume, die in offener Verbindung mit der vorderen Augenkammer stehend, dieselbe Flüssigkeit wie diese enthalten, werden die Fontanaschen Räume genannt. Sie sind beim Menschen kaum entwickelt.
Die Linse.
Der feinere Bau der Linse ist nur bei Berücksichtigung ihrer Entwicklungsgeschichte verständlich. Die Linse entsteht durch Abschnürung aus dem embryonalen Hautepithel und stellt dann ein hohles, von einer einfachen Lage zylindrischer Epithelzellen gebildetes Bläschen dar. Die Zellen der vorderen Wand dieses Bläschens werden unter geringfügiger Änderung ihrer Form zum Linsenepithel, die Zellen der hinteren Wand wachsen zu langen Linsenfasern aus, deren Zahl durch vielfache Teilung der am Äquator des Linsenbläschens befindlichen Zellen bedeutenden Zuwachs erfährt. Die Linsenfasern füllen schließlich den ganzen Hohlraum aus, so daß die Linse nun einen soliden Körper darstellt, der in seiner Hauptmasse aus den Linsenfasern besteht — ihre Summe bezeichnet man als Substantia lentis — und nur an seiner Vorderfläche von Linsenepithel überzogen wird, das am Äquator unter allmählicher Verlängerung seiner Elemente in die Linsenfasern übergeht. Eine vielleicht ausschließlich vom epithelialen Linsenbläschen her gebildete Linsenkapsel umhüllt das Ganze.
Die Substantia lentis läßt eine weichere Rindensubstanz und einen festeren Kern unterscheiden und besteht ganz aus sehr in die Länge gezogenen Epithelzellen, den Linsenfasern. Diese haben die Gestalt meist sechsseitiger, prismatischer Bänder, die an einem oder an beiden Enden kolbig verdickt sind. Man unterscheidet Zentralfasern, Übergangsfasern und Hauptfasern; die Zentralfasern sind kernlos, haben wellenförmige oder gezähnelte Ränder und sind gegen die Linsenachse zentriert. Auch die Übergangsfasern haben ihren Kern verloren. Beide bilden den festeren „Kern“ der Linse. Die Hauptfasern bilden den größten Teil der Substantia lentis und sind durch glatte Ränder und einen in der Nähe des Äquators gelegenen, ovalen Kern ausgezeichnet. Sämtliche Fasern werden durch eine geringe Menge von Kittsubstanz miteinander verbunden, die am vorderen und hinteren Pole der Linse stärker angehäuft ist und bei Mazerationsversuchen zur Bildung des sogenannten vorderen und hinteren Linsensternes Veranlassung gibt. Alle Linsenfasern verlaufen in meridionaler Richtung vom vorderen Linsenstern beginnend bis zum hinteren Linsenstern; jedoch umgreift keine Linsenfaser die ganze Hälfte der Linse: je näher dem vorderen Pole eine Faser entspringt, desto weiter vom hinteren Pol entfernt findet sie ihr Ende. Die Hauptfasern sind zu radiären Lamellen geordnet, deren Zahl beim erwachsenen Menschen über 2000 beträgt.
Die Lamellen sind bei niederen Wirbeltieren und unter den Säugern bei Nagern (z. B. beim Eichhörnchen) von großer Regelmäßigkeit, bei Affe und Mensch dagegen sehr unregelmäßig; auch die Querschnitte der Linsenfasern zeichnen sich bei letzteren durch ihre große Unregelmäßigkeit aus. Wir erblicken darin den Ausdruck einer größeren Elastizität und Schmiegsamkeit der ganzen Linse, die dadurch ganz besonders geeignet ist, den Anforderungen der Akkommodation zu entsprechen. (Bekanntlich ist die Akkommodationsbreite bei Mensch und Affe eine sehr viel größere als bei den übrigen Säugern. Über die irrige Vorstellung vom Aufbau der Linse aus konzentrischen Lamellen siehe Technik Nr. 186, S. 483.)
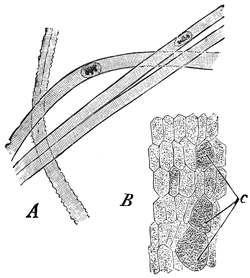
Fig. 370.
Linsenfasern eines neugeborenen Kindes. A Isolierte Linsenfasern, drei haben glatte, eine hat gezähnelte Ränder. 240mal vergrößert. Technik Nr. 185, S. 482.
B Querdurchschnittene Linsenfasern des Menschen, c Durchschnitte kolbiger Enden. 560mal vergr. Technik Nr. 186, S. 483.
Fig. 371.
Linsenkapsel und Linsenepithel des erwachsenen Menschen. C von der Innenfläche. 240mal vergr. Technik Nr. 187a. D von der Seite gesehen, aus einem Meridionalschnitt durch den Linsenäquator. 1. Kapsel, 2. Epithel, 3. Linsenfasern. 240mal vergrößert. Technik Nr. 187b, S. 483.
Das Linsenepithel wird durch eine einfache Lage am vorderen Linsenpol niedriger (2,5 µ), gegen den Äquator höher (bis 10 µ) werdender, kubischer Zellen gebildet, welche, die vordere Linsenfläche überziehend, bis zum Äquator reichen; hinter dem Äquator sind die Epithelzellen zu meridionalen Reihen geordnet, welche durch die am Äquator stattfindenden Zellteilungen und -verschiebungen verursacht werden. Am hinteren Ende dieser Reihen bilden sich die Epithelzellen, allmählich länger werdend, zu Linsenfasern um. Die Linsenkapsel ist beim Menschen eine vorn 6,5-25 µ, hinten 2-7 µ dicke, glashelle, elastische Membran.
Die Zonula ciliaris.
Von den inneren Zellen der Pars ciliaris retinae entstehen und entspringen in einer unmittelbar vor der Ora serrata gelegenen Zone feine, homogene Fasern, von denen einzelne in den Glaskörper eintreten, die Hauptmasse aber in den Tälern zwischen den Ziliarfortsätzen gegen die Linse zieht, wo sie vor, hinter und an dem Äquator selbst an der Linsenkapsel ihre Anheftung findet. Die Fasern sind also ektodermalen Ursprungs und werden von manchen Autoren als gliöse Produkte angesehen. Diese Fasern bilden in ihrer Gesamtheit eine nirgends vollkommen geschlossene Membran, die Zonula ciliaris, das Strahlenbändchen, das Befestigungsmittel der Linse. Durch seine Vermittlung gewinnen die muskulären Ziliarfortsätze ihren Einfluß auf die Linsengestalt.
Als Spatia zonularia (Canalis Petiti) werden die zwischen hinteren Zonulafasern und vorderer Glaskörperfläche befindlichen, miteinander zusammenhängenden Räume bezeichnet. Die Spatia sind gegen die hintere Augenkammer nicht vollkommen geschlossen.
Von anderen Autoren wird der zwischen den an die Vorderfläche und den an die Hinterfläche der Linsenkapsel tretenden Zonulafasern befindliche, dreieckige Raum Petitscher Kanal genannt, was schon deshalb unrichtig ist, weil die Zonulafasern keine an die Vorder- bzw. Rückfläche der Linse tretenden Blätter bilden; die Fasern durchkreuzen sich vielmehr in der Weise, daß ein Teil der auf die Linsenvorderfläche tretenden Fasern von hinten kommt, während andererseits auf die Linsenrückfläche ziehende Fasern von vorn kommen.
Der Glaskörper.
Der Glaskörper (Corpus vitreum) ist eine bei Säugern rein ektodermale Bildung, die von den gliösen Anteilen der Retinaanlage stammt und hauptsächlich von Fortsätzen der zwischen Ora serrata und Zonula befindlichen Radiärfasern (S. 458) gebildet wird. Er besteht beim Erwachsenen aus einer flüssigen Substanz, Humor vitreus, und dichteren oder lockeren Faserzügen, welche nach allen Richtungen durch die Flüssigkeit ausgespannt sind. Die Oberfläche des Glaskörpers ist von sehr widerstandsfähigen, dichten Faserlagen — eine besondere „Membrana hyaloidea“ existiert nicht — überzogen, die nach vorn in die Glashaut der Pars ciliaris retinae (S. 461) sich fortsetzen. Die im Glaskörper befindlichen Zellen sind: 1. runde Formen, wahrscheinlich Leukozyten, 2. als Ausnahmen stern- und spindelförmige Gebilde, Bindegewebszellen, die in embryonaler Zeit mit den später wieder verschwindenden Blutgefäßen (S. 475) in den Glaskörper gelangt sind. Helle Blasen (Vakuolen) enthaltende Zellen sind wahrscheinlich Untergangsformen.
Tunica externa.
Die Sklera besteht vorzugsweise aus Bindegewebsbündeln, welche sich in verschiedenen, hauptsächlich meridionalen und äquatorialen Richtungen durchflechten, und aus vielen, parallel den Bündeln verlaufenden elastischen Fasern; diese finden sich besonders reichlich an den Ansatzstellen der Augenmuskeln und am Sehnerveneintritt. Dazwischen liegen in Saftlücken, die in der Sklera unregelmäßig gestaltet sind, platte Bindegewebszellen. Die Dicke der Sklera ist hinten am mächtigsten (1 mm) und nimmt nach vorn allmählich ab.
Zwischen Sklera und Chorioidea befindet sich ein lockeres, reichlich mit elastischen Fasern und verästelten Pigmentzellen und platten pigmentfreien Zellen („Endothelzellen“) versehenes Gewebe, welches beim Lösen der Sklera von der Chorioidea teils ersterer, teils letzterer anhaftet und Lamina fusca sclerae oder Lamina suprachorioidea heißt.
Dadurch, daß die Sklera an ihrer äußeren Oberfläche nur durch sehr lockeres Bindegewebe mit dem übrigen in der Orbita liegenden Gewebe verbunden ist, wird die Möglichkeit zu den raschen Drehungen des Bulbus gegeben.
Der Übergang der Sklera in die Kornea erfolgt ganz direkt; die mehr wellig verlaufenden Sklerabündel gehen kontinuierlich in die gestreckten Fibrillenbündel der Hornhaut über, das Saftkanalsystem der Sklera kommuniziert mit dem der Kornea. Die mikroskopisch nicht scharf nachzuweisende Übergangslinie ist eine schräge, indem die Umwandlung der Sklera in das Korneagewebe in den tieferen Partien der Tunica externa früher erfolgt als vorn.
Die Kornea ist ein besonders ausgestalteter Teil der Tunica externa; makroskopisch durch die glasklare Beschaffenheit von der undurchsichtig weißen Sklera unterschieden, besitzt der Hauptteil der Hornhaut mikroskopisch eine große Ähnlichkeit mit der Sklera. Dieser Hauptteil wird nach der freien Oberfläche durch ein dem Haut- (bzw. Konjunktival- [s. unten S. 478]) epithel entstammendes Epithel abgeschlossen, das auf einer Basalmembran aufsitzt. Nach der vorderen Augenkammer bildet das einschichtige Epithel dieser Kammer, das der zu dem Ziliarmuskelapparat gehörigen, hinteren Basalmembran aufsitzt, die Grenze. Demnach finden sich 5 Schichten: 1. Das vordere Epithel, 2. die vordere Basalmembran, 3. die Substantia propria corneae, 4. die hintere Basalmembran (elastische Haut), 5. das hintere Epithel.
1. Das vordere Epithel ist ein geschichtetes, sehr regelmäßig gebautes Pflasterepithel, das aus 4-5 Lagen sich nach der Oberfläche zu abplattender Zellen zusammengesetzt ist. Seine Dicke beträgt beim Menschen 0,03 mm. Am Rande der Hornhaut setzt sich das Epithel in dasjenige der Conjunctiva sclerae fort.
2. Die vordere Basalmembran (Bowmansche Membran, besser „vordere Grenzschicht“), ist eine beim Menschen deutlich sichtbare, bis zu 0,01 mm dicke Schicht von fast homogenem Aussehen. Sie ist an ihrer Oberfläche mit feinen Zacken und Leisten zur Verbindung mit den Basalzellen des Hornhautepithels versehen; an ihrer Unterfläche geht sie allmählich in die Substantia propria corneae über, als deren Modifikation sie gilt.
Der Name „Lamina elastica anterior“ ist nicht zu empfehlen, da die Membran nicht aus elastischer Substanz besteht.
3. Die Substantia propria corneae bildet die Hauptmasse der Kornea. Sie besteht aus feinen, gerade verlaufenden Bindegewebsfibrillen, welche durch eine (flüssige?) interfibrilläre Kittsubstanz zu fast gleich dicken Bündeln vereinigt sind; die Bündel werden durch eine interfaszikuläre Kittsubstanz zu platten Lamellen verbunden, die in vielen Schichten übereinander gelegen sind und durch eine interlamelläre Kittsubstanz zusammengehalten werden. Die Lamellen sind parallel der Hornhautoberfläche gelagert und verlaufen in den Richtungen aller Meridiane. Einzelne, schräg verlaufende Bündel (sogenannte Fibrae arcuatae) verbinden die einzelnen Lagen mit ihren nächstoberen bzw. nächstunteren Nachbarn; besonders ausgeprägt finden sich solche Bündel in den vorderen Schichten der Substantia propria. Zahlreiche, gestreckte elastische Fasern befinden sich vorzugsweise in den tieferen Schichten der Substantia propria und bilden ein über der hinteren Basalmembran gelegenes, dichtes Netz: die Lamina elastica corneae.
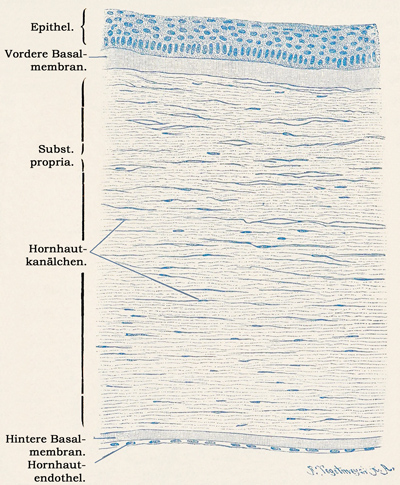
Fig. 372.
Senkrechter Durchschnitt der Hornhaut des Menschen. 260mal vergrößert. Technik Nr. 184, S. 482.
In die Kittsubstanz ist ein vielfach (bei manchen Tieren [z. B. beim Frosch] rechtwinklig) verzweigtes Kanalsystem eingegraben, die Saftkanälchen („Hornhautkanälchen“), welche an vielen Stellen zu breiteren, ovalen Lücken den Saftlücken („Hornhautkörperchen“) (Fig. 373) erweitert sind. Letztere liegen zwischen den Lamellen, während die Saftkanälchen außerdem noch zwischen den Bündeln verlaufen. Saftlücken und Saftkanälchen enthalten eine seröse Flüssigkeit; außerdem finden sich daselbst auch Zellen, und zwar a) fixe Hornhautzellen; sternförmige, abgeplattete, nach der einen Ansicht der einen Wand des Kanalsystems angeschmiegte, nach der anderen Ansicht Lücken und Kanäle völlig ausfüllende Bindesubstanzzellen (Fig. 374), die mit einem großen, oft sehr unregelmäßig gestalteten Kerne versehen sind und b) Wanderzellen (weiße Blutzellen).
4. Die hintere Basalmembran (Membrana Descemetii) ist eine glashelle, nicht elastische Haut von nur 0,006 mm Dicke. Sie ist durch ihre Verbindung mit der Ziliarmuskulatur bemerkenswert. Ihre Hinterfläche ist bei erwachsenen Menschen an der Peripherie der Hornhaut mit halbkugligen Erhabenheiten, sogenannten Warzen, besetzt.
5. Das „Hornhautendothel“ wird durch eine einschichtige Lage polygonaler, platter, mit rundlichen, bei Tieren nieren- bis hufeisenförmigen Kernen versehener Zellen hergestellt.
Fig. 373.
Flächenschnitt der Kornea des Ochsen. Negatives Silberbild, das Kanalsystem ist hell auf dunklem Grunde. ca. 240mal vergrößert. Technik Nr. 188, S. 484.
Fig. 374.
Flächenschnitt der Kornea des Kaninchens. Positives Bild des Kanalsystems, ca. 240mal vergrößert. Technik Nr. 190, S. 484.
Blutgefäße des Augapfels.
Die Blutgefäße des Augapfels sind in zwei scharf getrennte Gebiete gesondert, welche nur an der Sehnerveneintrittsstelle miteinander in Verbindung stehen.
I. Gebiet der Vasa ciliaria. Dasselbe ist dadurch charakterisiert, daß die Venen ganz anders verlaufen als die Arterien.
1. Von den Arterien versorgen a) die Arteriae ciliares posteriores breves den glatten Teil der Chorioidea, während b) die Arteriae ciliares posteriores longae und c) Arteriae ciliares anteriores vornehmlich für Corpus ciliare und Iris bestimmt sind.
a) Die etwa 20 Äste der Aa. ciliares posteriores breves durchbohren in der Umgebung des Sehnerveneintrittes die Sklera; nach Abgabe von Zweigen, welche die hintere Hälfte der Skleraoberfläche versorgen, lösen sich die Arterien in ein engmaschiges Kapillarnetz, die Lamina choriocapillaris auf. Am Optikuseintritte anastomosieren die Arterien mit Ästen der Arteria centralis retinae (c) und bilden hierdurch den Circulus arteriosus nervi optici; an der Ora serrata bestehen Anastomosen mit rücklaufenden Zweigen der A. ciliaris postica longa und der Aa. ciliares anticae (Fig. 375).
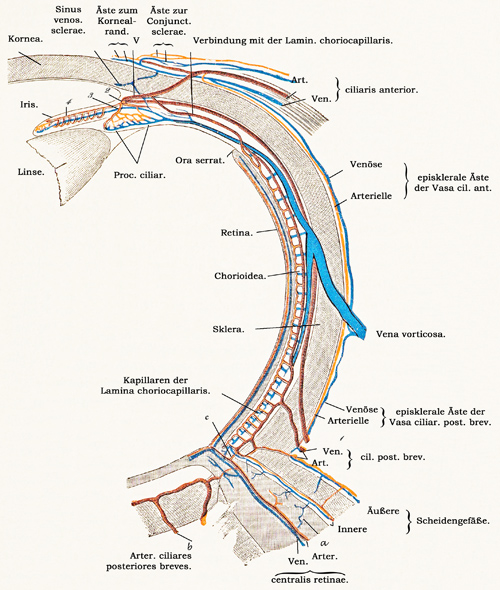
Fig. 375.
Gefäße des Auges. Schema mit Benützung der Darstellung Lebers. Tunica externa gekörnt, Tunica media weiß, Tunica interna u. N. opticus gekreuzt gekörnt. V Verbindung der A. ciliar. ant. mit dem Circulus iridis major.
b) Die beiden Aa. ciliares posteriores longae (1) durchbohren die Sklera gleichfalls in der Nähe des Sehnerveneintrittes; die eine Arterie zieht an der nasalen, die andere an der temporalen Seite des Augapfels zwischen Chorioidea und Sklera bis zum Corpus ciliare, wo jede Arterie in zwei divergierende, längs dem Ziliarrande der Iris verlaufende Äste sich spaltet; indem diese Äste mit den Ästen der anderen langen Ziliararterie anastomosieren, wird ein Gefäßring, der Circulus iridis major (2) gebildet, aus welchem zahlreiche Zweige für den Ziliarkörper (bzw. für die Proc. ciliares) (3), sowie für die Iris(4) hervorgehen. Nahe am Pupillarrande der Iris bilden die Arterien einen unvollkommen geschlossenen Ring, den Circulus iridis minor.
c) Die Aa. ciliares anteriores kommen von den die geraden Augenmuskeln versorgenden Arterien, durchbohren in der Nähe des Kornealrandes die Sklera und senken sich teils in den Circulus iridis major ein, teils versorgen sie den Ziliarmuskel, teils geben sie rücklaufende Äste zur Verbindung mit der L. choriocapillaris ab. Ehe die vorderen Ziliararterien die Sklera durchbohren, geben sie nach hinten Zweige für die vordere Hälfte der Sklera, nach vorn Zweige zur Conjunctiva sclerae und zum Kornealrande ab. Die Kornea selbst ist gefäßlos, nur am Rande besteht ein in den vorderen Lamellen der Substantia propria gelegenes Randschlingennetz.
2. Sämtliche Venen verlaufen gegen den Äquator, woselbst sie zu vier (seltener fünf oder sechs) Stämmchen, den Wirtelvenen, Venae vorticosae, zusammentreten, welche sofort die Sklera durchbohren (Fig. 375) und in eine der Venae ophthalmicae münden. Ausgenommen von diesem Verlaufe sind kleine, den Arteriae ciliar. poster. breves und den Art. ciliares anter. parallel ziehende Venae ciliares poster. breves und Venae ciliares anteriores; letztere erhalten Zweige aus dem Ziliarmuskel, von dem episkleralen Gefäßnetze, von der Conjunctiva sclerae und von dem Randschlingennetze der Hornhaut. Die episkleralen Venen stehen am Äquator auch mit den Venae vorticosae in Verbindung. Die vorderen Ziliarvenen verbinden sich endlich mit dem Sinus venosus sclerae (Schlemm). Dieser ist ein ringförmig um die Hornhaut verlaufender Venenkranz, der noch in der Sklera gelegen, vollkommen geschlossene Wandungen besitzt. Er nimmt kleine Venen aus dem Kapillarnetz des Ziliarmuskels auf.
Die früher behauptete Verbindung mit der vorderen Augenkammer wird dadurch vorgetäuscht, daß gefärbte, in die vordere Augenkammer injizierte Flüssigkeiten durch Filtration in den Venenkranz hinübertreten.
II. Gebiet der Vasa centralia retinae (Fig. 375). Die A. centralis retinae tritt, 15-21 mm vom Augapfel entfernt, in die Achse des Sehnerven und verläuft daselbst bis zur Oberfläche des Sehnerveneintrittes. Hier zerfällt sie in zwei Hauptäste, von denen der eine aufwärts, der andere abwärts gerichtet ist, und deren jeder, sich weiter verzweigend, die ganze Pars optica retinae bis zur Ora serrata versorgt. Während des Verlaufes im Sehnerven gibt die Arterie zahlreiche kleine Äste ab, welche eingeschlossen in die Fortsetzungen der Pialscheide zwischen den Nervenfaserbündeln verlaufen und sowohl mit kleinen, aus dem umliegenden Fettgewebe in die Optikusscheiden eingetretenen Arterien (a) als auch mit Zweigen der Aa. ciliares posteriores breves (b) anastomosieren. In der Netzhaut selbst löst sich die Arterie in Kapillaren auf, welche bis in die äußere retikuläre Schicht hineinreichen. Die Neuroepithelschicht besitzt keine selbständigen Gefäße. Die aus den Kapillaren hervorgehenden Venen laufen parallel mit den Zweigen der Arterie und sammeln sich endlich zu einer gleichfalls in der Achse des Sehnerven eingeschlossenen Vena centralis retinae.
Beim Embryo geht ein Zweig der A. centr. retin., die Arteria hyaloidea, durch den Glaskörper bis zur hinteren Linsenfläche. Diese Arterie bildet sich schon vor der Geburt zurück, der sie einschließende Kanal jedoch läßt sich oft noch im Glaskörper des Erwachsenen nachweisen; er heißt der Cloquetsche Kanal oder der Canalis hyaloideus.
Die Lymphbahnen des Augapfels.
Das Auge besitzt keine eigentlichen Lymphgefäße, sondern eine Reihe von untereinander zusammenhängenden Spalträumen; man kann am Auge zwei Komplexe solcher Räume unterscheiden, ein vorderes und ein hinteres Gebiet. Zum vorderen Gebiet gehören: 1. die Saftkanälchen der Kornea und Sklera (?); 2. die vordere Augenkammer, welche durch die kapillare Spalte zwischen Iris und Linse mit 3. der hinteren Augenkammer kommuniziert. Diese letztere steht in offener Verbindung mit 4. den Spatia zonularia. Diese drei letzteren Räume hängen zusammen und lassen sich durch Injektion von der vorderen Augenkammer aus füllen. Zum hinteren Gebiete gehören: der Canalis hyaloideus (S. 475), ferner der „intravaginale Lymphraum“ (d. i. der Subduralraum und der Subarachnoidealraum der Optikusscheiden), dann der enge Spalt zwischen Chorioidea und Sklera: der Perichorioidealraum, und endlich das von zartem Bindegewebe durchzogene Spatium interfasciale (Tenon), das sich auf die Duralscheide des N. opticus als supravaginaler Raum bis zum For. opticum fortsetzt. Diese Räume lassen sich vom Subarachnoidealraume des Gehirns aus füllen. Der Inhalt der Räume ist von den Gefäßen geliefertes Filtrat, welches auch den Glaskörper durchtränkt. Die Menge dieser Flüssigkeit ist im Perichorioidealraume, sowie in dem Interfaszialraume, normalerweise eine ganz minimale. Diese beiden Räume dienen zur Ermöglichung der Bewegung der Aderhaut bzw. des Augapfels und können funktionell als Gelenkräume aufgefaßt werden.
Die Nerven des Augapfels.
Die Nerven des Augapfels durchbohren im Umkreise des Sehnerveneintrittes die Sklera und verlaufen zwischen Sklera und Chorioidea nach vorn; nachdem sie mit Ganglienzellen versehene Zweige an alle Chorioidealgefäße abgegeben haben, bilden sie ein auf dem Corpus ciliare gelegenes, mit Ganglienzellen untermischtes Ringgeflecht, den Plexus gangliosus ciliaris, von welchem Äste für den Ziliarkörper, die Iris und die Hornhaut entspringen.
Die Ziliarkörpernerven enden fein zugespitzt zum Teil an den Blutgefäßen und am Ziliarmuskel, zum Teil zwischen den Muskelbündeln des Ziliarkörpers in Form verästelter Endbäumchen, die vielleicht das Muskelgefühl vermitteln, zum Teil an der skleralen Oberfläche des Ziliarkörpers in Form eines feinen Netzwerkes. Die markhaltigen Irisnerven bilden Geflechte und verlieren im Verlauf gegen den Pupillarrand ihre Markscheide; von ihren Endästen tritt ein Teil zu Sphinkter und Dilatator und zur Gefäßwand, während ein anderer Teil ein dicht unter der vorderen Irisfläche gelegenes, sensibles Netz bildet. Ganglienzellen fehlen der Iris des Menschen und der Säuger.
Fig. 376.
Aus einem senkrechten Schnitte durch die menschliche Kornea 240mal vergrößert, n sich teilender Nerv, die vordere Basalmembran durchbohrend, s subepithelialer Plexus, unter den Zylinderzellen liegend, a zwischen den Epithelzellen aufsteigende Fasern, zum intraepithelialen Plexus gehörig. Technik Nr. 192, S. 485.
Die Hornhautnerven treten zuerst in die Sklera über und bilden hier ein ringförmig den Kornealrand umgebendes Geflecht, den Plexus annularis, aus welchem Äste für die Bindehaut und für die Kornea hervorgehen. Erstere enden beim Menschen in büscheligen Geflechten, Endnetzen und in kugligen Endkolben (S. 265), die dicht unter dem Epithel der Bindehaut gelegen sind und auch noch in der Substantia propria corneae, 1-2 mm nach innen vom Kornealrande, gefunden werden. Letztere verlieren nach dem Eintritte in die Substantia propria corneae ihre Markscheide und durchsetzen als nackte Achsenzylinder die ganze Hornhaut. Dabei bilden sie Netze, die nach ihrer Lage als Stromaplexus in den tieferen Schichten der Hornhaut, als subbasaler Plexus unter der vorderen Basalmembran, als subepithelialer Plexus dicht unter dem Epithel beschrieben werden. Von letzterem Plexus erheben sich feinste Nervenfibrillen, die zwischen den Epithelzellen abermals ein sehr feines Geflecht, den intraepithelialen Plexus bilden, dessen Ausläufer endlich frei zwischen den Epithelzellen enden.
Die in der Sklera befindlichen Nerven bilden Geflechte an Blutgefäßen und Lymphräumen, an welch letzteren auch Endigungen in Form dichtverzweigter Gebilde vorkommen. Außerdem bestehen noch freie Nervenendigungen, gleich denen in der Dura.
Die Augenlider.
Die Augenlider, Palpebrae, sind Falten der äußeren Haut, welche Muskeln, lockeres und festes Bindegewebe, sowie Drüsen einschließen. Die äußere Platte des Augenlides behält den Charakter der gewöhnlichen äußeren Haut bei, die innere, dem Augapfel zugekehrte Platte ist dagegen in erheblicher Weise modifiziert und heißt Conjunctiva palpebralis. Die äußere Haut des Augenlides überzieht noch den freien, vorderen Lidrand und geht erst am hinteren Lidrande, der Lidkante, in die Conjunctiva palpebralis über. Man studiert die Zusammensetzung des Augenlides am besten an Sagittalschnitten (Fig. 377). Wir treffen von vorn nach hinten gezählt, folgende Schichten: 1. Die äußere Haut; sie ist dünn, mit feinen Wollhaaren besetzt, deren Bälge sie einschließt; im Korium finden sich ferner kleine Knäueldrüsen sowie pigmentierte Bindesubstanzzellen, die bekanntlich an anderen Stellen des Korium selten vorkommen. Das subkutane Gewebe ist sehr locker, reich an feinen elastischen Fasern, dagegen arm an Fettzellen, die selbst vollkommen fehlen können. Gegen den Lidrand zu ist das Korium derber und mit höheren Papillen besetzt. Schräg in den vorderen Lidrand sind in 2 bis 3 Reihen die großen Wimperhaare, die Zilien, eingepflanzt, deren Bälge bis tief in das Korium reichen. Die Zilien sind einem raschen Wechsel unterworfen, ihre Lebensdauer wird auf 100-150 Tage geschätzt; dementsprechend findet man häufig Ersatzhaare in verschiedenen Entwicklungsstadien (s. S. 437). Die Haarbälge der Zilien sind mit kleinen Talgdrüsen ausgestattet, außerdem nehmen sie die Ausführungsgänge der Glandulae ciliares (Moll) auf, welche in ihrem feineren Baue den Knäueldrüsen gleichen und sich von diesen nur dadurch unterscheiden, daß ihr unteres Ende zu keinem so stark entwickelten Knäuel verschlungen ist.
2. Hinter dem subkutanen Gewebe liegen die transversalen Bündel des quergestreiften M. orbicularis palpebrarum; die hinter den Zilien liegende Abteilung dieses Muskels wird Musculus ciliaris Riolani genannt.
3. Hinter dem Muskel trifft man auf die Ausstrahlung der Sehne des M. levator palpebrae; ein Teil derselben verliert sich in dem dort befindlichen Bindegewebe (der sogenannten Fascia palpebralis), ein anderer Teil, welcher auch glatte Muskelfasern, den Musc. tarsalis superior (Müller) einschließt, setzt sich an den oberen Rand des Tarsus.
4. Der Tarsus ist eine derbfaserige bindegewebige Platte, welche dem Augenlide Festigkeit und Stütze verleiht. Er liegt dicht vor der Conjunctiva palpebr., welcher er auch zugezählt wird, und nimmt die zwei unteren Drittel der Höhe des ganzen Augenlides ein. In seine Substanz sind die Meibomschen Drüsen (Tarsaldrüsen) eingebettet, langgestreckte Körper, welche aus einem weiten, vor der Lidkante sich öffnenden Ausführungsgang und rings in diesen mündenden, kurz gestielten Bläschen bestehen. Hinsichtlich des feineren Baues stimmen die Meibomschen Drüsen mit den Talgdrüsen überein. Am oberen Ende des Tarsus, zum Teil noch von dessen Substanz umschlossen, liegen verästelte tubulöse Drüsen, die im feineren Bau mit der Tränendrüse übereinstimmen und akzessorische Tränendrüsen genannt werden; sie finden sich vorzugsweise in der inneren (nasalen) Hälfte des Augenlides.
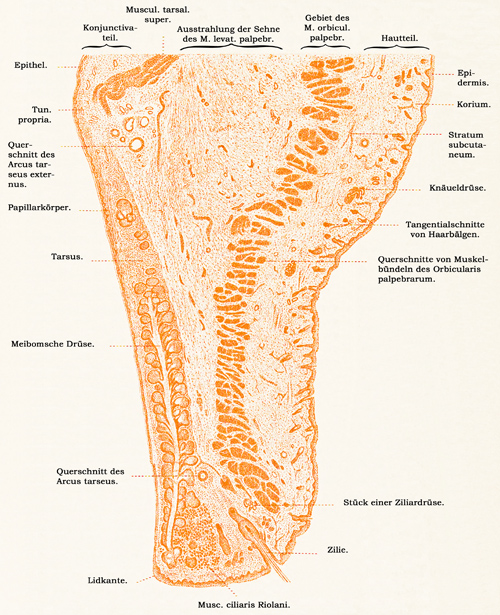
Fig. 377.
Sagittaler Durchschnitt des oberen Augenlides eines halbjährigen Kindes. Die Mündung der Tarsaldrüse ist nicht vom Schnitt getroffen. 15mal vergrößert. Technik Nr. 110, S. 289.
Hinter dem Tarsus liegt die eigentliche Konjunktiva, welche aus Epithel und einer Tunica propria besteht. Das Epithel ist geschichtetes Zylinderepithel, mit mehreren Lagen rundlicher Zellen in der Tiefe und einer Lage meist kurzer, zylindrischer Zellen an der Oberfläche. Letztere tragen einen schmalen hyalinen Kutikularsaum. Auch Becherzellen finden sich in wechselnder Anzahl. An dem hinteren Lidrande geht das Epithel allmählich in das geschichtete Pflasterepithel über, das sich zuweilen weit auf die Conjunctiva palpebralis erstreckt. Der untere Teil der Conjunctiva palpebralis ist glatt. Im oberen Teile dagegen bildet das Epithel unregelmäßig buchtige Einsenkungen, die „Konjunktivabuchten“, die individuell sehr verschieden entwickelt, in höheren Graden der Ausbildung auf Durchschnitten das Bild von Drüsen gewähren können. Die Tunica propria conjunctivae besteht aus Bindegewebe, aus weißen Blutzellen und Plasmazellen in verschiedener Menge. Bei Tieren, besonders bei Wiederkäuern, bilden die ersteren wahre Lymphknötchen, von deren Kuppe aus Lymphozyten durch das Epithel auf die Oberfläche wandern; auch beim Menschen ist die Durchwanderung von Lymphozyten, jedoch nur in geringerem Grade, nachweisbar. Im Gebiete der Konjunktivabuchten wird die Tunica propria durch die oben erwähnten Epitheleinsenkungen in papillenähnliche Bildungen abgeteilt, daher auch der Name „Papillarkörper“.
Die Conjunctiva palpebralis springt oben (am unteren Augenlide unten) auf den Augapfel über, dessen Vorderfläche sie überzieht. An der Umschlagstelle, dem Fornix conjunctivae, findet sich unter der Tunica propria ein aus Bindegewebsbündeln bestehendes, lockeres, subkonjunktivales Gewebe, dessen Vorhandensein die Verschieblichkeit der Konjunktiva erklärt. Das Epithel ist dasselbe wie am Lidteile der Konjunktiva; die Tunica propria ist ärmer an weißen Blutzellen, enthält jedoch auch beim Menschen normalerweise kleine Knötchen in verschiedener Anzahl (bis zu 20) und einzelne Schleimdrüsen. Die Conjunctiva sclerae ändert sich insofern, als ihr Epithel in einiger Entfernung vom Hornhautrande geschichtetes Pflasterepithel wird, das sich in jenes der Kornea fortsetzt (s. auch Fig. 368), und ihre Tunica propria reichlich elastische Fasern enthält; am Kornealrande ist die Tunica propria conjunctivae mit wohlausgebildeten Papillen versehen.
Die Conjunctiva sclerae ist nur beim Europäer pigmentlos, bei anderen Rassen und bei (allen?) Säugetieren enthält sie Pigment, das in den tiefsten Lagen des Epithels (am dichtesten am Kornealrande) gelagert ist.
Das rudimentäre, dritte Augenlid (Plica semilunaris) besteht aus Bindegewebe und einem geschichteten Pflaster- oder auch einem Übergangsepithel. Die Caruncula lacrimalis, ursprünglich ein Teil des unteren Augenlides, gleicht im feineren Baue der äußeren Haut (nur das Stratum corneum fehlt) und enthält feine Haare, Talg-, akzessorische Tränendrüsen und in der Mitte kleine Knäueldrüsen.
Die Blutgefäße der Augenlider gehen von Stämmchen aus, welche vom äußeren und inneren Augenwinkel aus herantretend einen Bogen am Lidrande, Arcus tarseus (Fig. 377), und einen zweiten Bogen am oberen Ende des Tarsus, den Arcus tarseus externus bilden. Sie verbreiten sich im Hautteile, umspinnen die Tarsaldrüsen, durchsetzen den Tarsus, um ein unter dem Konjunktivaepithel liegendes, dichtes Kapillarnetz zu speisen; sie versorgen ferner den Fornix conjunctivae, die Conjunctiva bulbi und anastomisieren mit den Arteriae ciliares anteriores.
Die Lymphgefäße bilden in der Conjunctiva tarsi ein sehr dichtes, an der Vorderseite des Tarsus dagegen ein sehr dünnes „prätarsales“ Netz. Dazu gesellt sich ein drittes, in der Haut und im subkutanen Gewebe reichlich entwickeltes Netz; alle drei Netze stehen miteinander in Verbindung. Die Lymphgefäße der Conjunctiva bulbi enden nach den Angaben der einen Autoren am Hornhautrande geschlossen, nach anderen Angaben reichen sie mit feinen Ausläufern in das Gewebe der Hornhaut und stehen durch diese mit dem Saftkanalsystem in Zusammenhang.
Die Nerven bilden sowohl im Tarsus wie auch in der Conjunctiva palpebralis ein sehr dichtes Geflecht, welches durch eine eigentümliche, knäuelförmige, verschlungene Anordnung seiner Fasern ausgezeichnet ist. Ein Teil des Tarsusgeflechtes umspinnt die Meibomschen Drüsen und besteht hier aus vielen marklosen und wenigen markhaltigen Nervenfasern, ein anderer Teil endet in der Wandung der Blutgefäße. Von dem „Konjunktivalgeflecht“ entspringen markhaltige Nervenfasern, die, schräg gegen Lidrand und Conjunctiva palpebralis verlaufend, ihre Markscheide verlieren und zum Teil direkt in das Epithel eindringen, um hier frei verästelt zu enden, zum Teil aber in dicht unter dem Epithel gelegenen Endkolben (S. 265), Büscheln und Netzen aufhören. Derartige Endkolben finden sich in großer Anzahl nicht nur am Lidrande (in dessen Papillen) und in der Conjunctiva palpebralis, sondern auch in der Conjunctiva bulbi und im Hornhautrande (s. auch S. 476).