II. Abschnitt. Mikroskopische Anatomie und spezielle Technik. (continued 4)
Reading edition
Nr. 88. Sehnen. Man schneide ein 5-10 cm langes Stück einer Sehne aus und lasse dasselbe an der Luft (nicht an der Sonne) trocknen. Dünne Sehnen (z. B. die des M. flexor. digit. pedis) sind bei Zimmertemperatur schon nach 24 Stunden hinreichend trocken, dickere bedürfen mehrerer Tage. Dann stelle man mit dem Skalpell (nicht mit dem Rasiermesser) eine glatte Querschnittfläche dar, und schnitzle feine Späne von der Sehne, indem man den Daumen der rechten Hand an die eine Seite, das von den übrigen Fingern gehaltene Skalpell an die andere Seite der Sehne ansetzt. Die meist sehr kleinen Späne werden in ein Schälchen mit destilliertem Wasser geworfen und nach 2 Minuten in einem Tropfen destillierten Wassers betrachtet (Fig. 127); will man konservieren, so färbe man in 3 ccm Pikrokarmin (5 Minuten lang) und schließe in verdünntem Glyzerin (S. 48) ein. Sehr häufig sieht man auf dem Querschnitte eine das ganze Präparat durchziehende Streifung, welche durch die Messerführung entstanden ist.
Einen zweiten Schnitt bringe man ungefärbt in einem Tropfen Wasser auf einen Objektträger und lasse dann unter dem Deckglase einen Tropfen Essigsäure zufließen. Die Randpartien des Querschnittes werden alsbald zu gewundenen Bändern aufquellen (Essigsäurereaktion des Bindegewebes S. 117).
Nr. 89. Muskeln und Sehnen. Man fixiere eine junge (10-20 Tage alte) weiße Maus mit Sublimatkochsalzlösung (S. 16, § 4, 8) und behandle sie entsprechend (S. 10) weiter, schneide dann aus der Brustwand ein Stück heraus, das etwa drei Rippenknorpel mit den dazwischen verlaufenden Interkostalmuskeln enthält, bette in Zelloidinparaffin (S. 25) ein. Die 5 µ dicken Schnitte werden aufgeklebt und nach Nr. 48 b gefärbt (s. Fig. 126).
Andere, zum Teil sehr komplizierte Methoden siehe in den Büchern über Mikroskopische Technik (S. 32).
2. Skelettsystem.
Die Zusammensetzung des Skelettsystems aus Knorpel, Knochen, Bindegewebe, die mannigfachen speziellen Einrichtungen, sowie die Art der Verbindung mit dem Muskelsystem werden durch einige Angaben aus der Entwicklung des Skelettsystems verständlich.
Die Knochen sind verhältnismäßig spät auftretende Bildungen. Es gibt eine embryonale Zeit, in welcher Muskeln, Nerven, Gefäße, Hirn, Rückenmark usw. schon wohl ausgebildet sind, vom Knochen aber noch keine Spur vorhanden ist. In jener Zeit wird das Skelett des Körpers durch embryonales Bindegewebe und hyalinen Knorpel gebildet. Mit Ausnahme einiger Teile des Schädels und fast aller Teile des Gesichtes sind alle später knöchernen Teile des Skelettes erst durch Knorpel vertreten; so finden wir z. B. bei der oberen Extremität Humerus, Radius, Ulna, Carpus und die Skeletteile der Hand als Knorpelstücke, die aber nicht wie der spätere Knochen hohl, sondern durchaus solid sind. An die Stelle dieses Knorpelskelettes tritt nun allmählich das knöcherne Skelett. Die zuerst auftretende Knochensubstanz entsteht aber zumeist an Stellen des Körpers, die einer knorpeligen Stütze entbehren, also ohne Anlehnung an Knorpel; so entstandene Knochen nennen wir Bindegewebsknochen (die Seitenteile des Schädels, das Schädeldach und fast alle Gesichtsknochen, zum Teil auch die Klavikula).
Zu den knorpelig vorgebildeten Knochen gehören dagegen: sämtliche Knochen des Stammes, der Extremitäten, der größte Teil der Schädelbasis (Hinterhauptbein mit Ausnahme des oberen Teiles der Schuppe desselben, Keilbein mit Ausnahme der inneren Lamelle des Proc. pterygoideus, Felsenbein und die Gehörknöchelchen, Siebbein und die untere Nasenmuschel) und das Zungenbein.
a) Bei den sogenannten Bindegewebsknochen liegen die Verhältnisse am einfachsten.
Hier verläuft die Bildung der Knochensubstanz wie es auf S. 112 geschildert wurde (vgl. Fig. 64). Die Knochen wachsen durch Bildung immer neuer Knochenmassen an den Rändern (flächenhaftes Wachstum) und an den Oberflächen (Dickenwachstum); die Folge reichlicher Knochenablagerung an den Oberflächen ist, daß später bei diesen Knochen außen und innen kompakte Knochenschalen und dazwischen spongiöse Knochensubstanz (s. S. 214) (hier Diploe genannt) gefunden werden. Die Bindegewebslagen an der inneren und äußeren Oberfläche der Knochen stehen mit ihren Fibrillen zum Teil in unmittelbarer Verbindung mit den Fibrillen der Knochensubstanz selbst; setzen Muskeln an der Knochenoberfläche an, so gehen deren Sehnenfibrillen unmittelbar in das den Knochen umhüllende Bindegewebe und durch dieses in den Knochen über. Muskel, Sehne und Knochensubstanz stellen also ein in sich zusammenhängendes System schon von der Entwicklung her dar.
Die Art des Knochenwachstums und seine Einordnung in das allgemeine Körperwachstum bedingen es, daß die Knochensubstanz in ihrem Bestande dauernd erneuert werden muß. Das harte Knochengewebe kann nur durch Apposition wachsen, ist dagegen nicht dehnbar. Soll die anfangs sehr kleine Form eines Skeletteiles (z. B. des Unterkiefers eines 3monatigen Embryos) in diejenige des Erwachsenen übergeführt werden, dabei aber jederzeit den an sie gestellten Anforderungen entsprechen, so darf nicht nur neue Knochensubstanz gebildet, sondern es müssen auch schon gebildete Teile wieder entfernt werden. Fast überall, wo eine solche Resorption von Knochensubstanz stattfindet, sieht man grubige, meist scharf begrenzte Vertiefungen an den Knochenrändern („Howshipsche Lakunen“); in ihnen liegen — wahrscheinlich durch Verschmelzung vorher nur durch feine Fortsätze miteinander verbundener Bindegewebszellen entstanden, also synzytiale (s. S. 153) — Riesenzellen, die man als Osteoklasten (Knochenbrecher) bezeichnet (s. Fig. 128).
b) Entwicklung knorpelig vorgebildeter Knochen. Schwerer zu übersehen ist die Entstehung der Bewegungsapparate dort, wo der Bildung der knöchernen Stützsubstanz Knorpelbildung vorausgeht.
Der Knorpel verschwindet in diesen Skeletteilen bis auf geringe Reste (besonders Gelenkknorpel) vollkommen; sein frühes Auftreten in der Ontogenese wird einmal dadurch verständlich, daß wir Wirbeltiere kennen, deren Skelett zeitlebens aus Knorpel aufgebaut ist (Cyclostomen, Selachier), so daß man annimmt, daß die Knorpelsubstanz auch phylogenetisch älter ist. Außerdem spielt aber anscheinend der Knorpel beim Formen und Wachsen dieser Skeletteile eine große Rolle. Vor allem kommt dabei die Fähigkeit des Knorpels interstitiell zu wachsen in Betracht.
Man darf auch wohl annehmen, daß die sehr frühe Verbindung der meisten knorpelig vorgebildeten Skeletteile mit Muskeln die Notwendigkeit mit sich brachte, das Stützgewebe an diesen Stellen so früh zu verhärten, zu einer Zeit, wo Knochenbildung noch nicht in Frage kommt. So bietet die knorpelige Vorstufe eines Knochens den frühdifferenzierten Muskeln die notwendige Ansatzfläche und bestimmt den Lageort und die Form des später entstehenden Knochens.
Bei der Umwandlung dieser Knorpel in Knochen gehen zwei Prozesse Hand in Hand, die Neubildung von Knochengewebe, die in allen wesentlichen Punkten mit derjenigen bei den Bindegewebsknochen übereinstimmt, und die Zerstörung des Knorpels; letztere gibt Veranlassung zu sehr komplizierten Bildern. Topographisch sehen wir an zwei Orten zunächst relativ unabhängig voneinander Knochensubstanz entstehen: 1. an der äußeren Oberfläche des Knorpels (perichondraler Knochen), 2. im Inneren des Knorpels (enchondraler Knochen).
1. Die perichondrale Ossifikation (wir besprechen hier nur die Entwicklung eines Röhrenknochens) beginnt damit, daß aus dem perichondralen Bindegewebe unter Anteilnahme von Osteoblasten in der Mitte der Diaphyse ein sich allmählich verstärkender Knochenmantel gebildet wird.
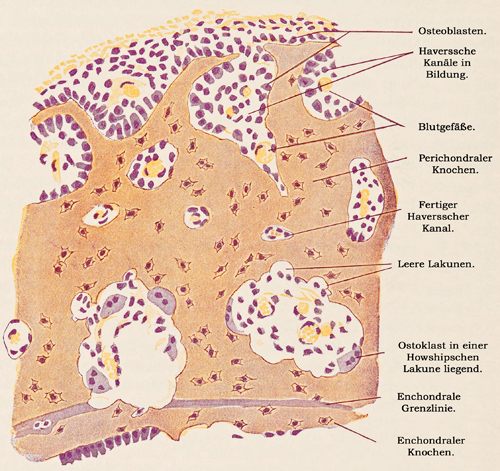
Fig. 128.
Stück eines Querschnittes durch einen Röhrenknochen einer neugeborenen Katze. Die zwei großen Hohlräume unten sind Haverssche Räume. 240mal vergr. Technik Nr. 90, S. 224.
In der Mitte des Skelettstückes stets dicker, verdünnt sich die Schale nach den Epiphysen zu, so daß diese selbst ohne Knochenmantel bleiben.
Die perichondrale Knochenrinde entsteht nicht in fortlaufender, gleichmäßig dicker Schichte, sondern man bemerkt an vielen Stellen Vertiefungen der Knochenrinde, in denen Blutgefäße, umgeben von Osteoblasten liegen; anfangs sind diese Vertiefungen nur gegen die Peripherie offene Rinnen; mit immer vorschreitender Verdickung der perichondralen Knochenschichten werden die Rinnen von außen geschlossen und stellen nun gefäßhaltige Kanäle (Haverssche Kanäle) dar. Durch die Tätigkeit der in den Haversschen Kanälen eingeschlossenen Osteoblasten (Fig. 128) werden neue Knochenschichten, die späteren Haversschen Lamellen gebildet.
2. Gleichzeitig mit dem ersten Auftreten von Knochensubstanz im Perichondrium machen sich die ersten Anzeichen des enchondralen Verknöcherungsvorganges bemerkbar. Die ersten Veränderungen bestehen hier darin, daß an einer bestimmten Stelle des Knorpels die Zellen sich vergrößern, sich teilen, so daß mehrere in einer Knorpelhöhle liegen; dann wird die Grundsubstanz selbst durch Einlagerung von Kalksalzen feinkörnig getrübt, sie verkalkt. Solche Stellen sind bald mit unbewaffnetem Auge zu bemerken und heißen Ossifikationspunkte (oder besser Verkalkungspunkte (Fig. 129). Die vom Verkalkungspunkte entfernteren Knorpelpartien wachsen weiter in die Dicke und Länge, während am Verkalkungspunkte selbst kein Wachstum mehr stattfindet; dadurch erscheint jene Stelle des Skelettstückes wie eingeschnürt (Fig. 129). Unterdessen ist an der Oberfläche des Verkalkungspunktes ein an jungen Zellen und Blutgefäßen reiches Gewebe, das osteoblastische Gewebe, aufgetreten. Dieses dringt in den Knorpel ein und bringt die verkalkte Knorpelgrundsubstanz zum Zerfall; die Knorpelzellen werden frei und gehen zugrunde; so ist eine kleine Höhle im Verkalkungspunkte entstanden, sie heißt der primordiale Markraum.
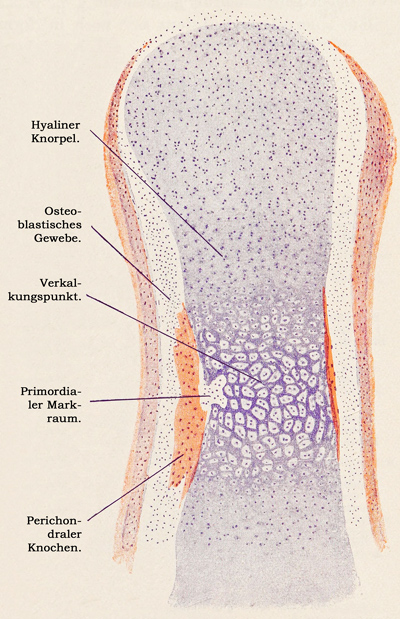
Fig. 129.
Stück eines dorsopalmaren Längsschnittes einer Kleinfingerphalanx eines 6monatigen menschlichen Fetus. 60mal vergrößert. Am Verkalkungspunkt sind die Knorpelhöhlen vergrößert und enthalten mehrere Zellen, weiter oben stehen die Knorpelzellen in Gruppen. Jede Gruppe ist durch wiederholte Teilung aus einer Knorpelzelle hervorgegangen. Technik Nr. 90, S. 224.
Die nächste Umgebung desselben macht nun die gleichen Prozesse durch wie zu Beginn, d. h. die Knorpelzellen vergrößern sich, die Knorpelgrundsubstanz verkalkt. Allmählich erfolgt eine immer mehr fortschreitende Vergrößerung des Markraumes, indem neue Partien des Knorpels einschmelzen. Dabei werden die Kapseln vieler Knorpelzellen eröffnet, die Zellen gehen zugrunde, während die zwischen diesen gelegene verkalkte Knorpelgrundsubstanz sich noch in Form zackiger, in den Markraum ragender Fortsätze (Fig. 130) erhält. Der Markraum ist jetzt eine buchtige Höhle, gefüllt mit Blutgefäßen und mit primärem Knochenmark, d. h. verzweigten Bindegewebszellen, die miteinander anastomosieren. Ein Teil dieser Zellen wird bald zu zytoplasmareichen Elementen, Osteoblasten, die sich nach Art eines einschichtigen Epithels an die Wände des Markraumes an legen und daselbst zu Knochenzellen werden (s. S. 113). Unterdessen treten weiße Blutzellen in immer steigender Menge auf, die schließlich die Hauptmasse der zelligen Elemente des Knochenmarkes bilden und damit das primäre Knochenmark zum „roten“ (besser sekundären) Knochenmark umwandeln.
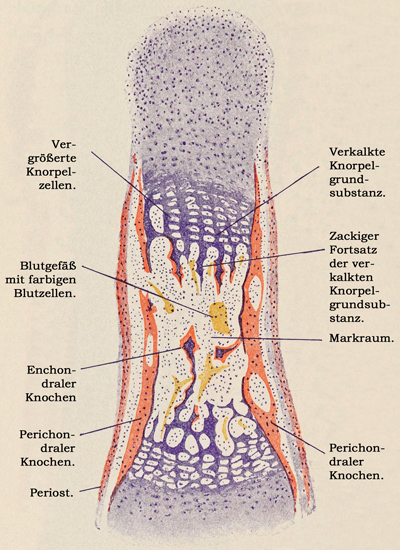
Fig. 130.
Stück eines dorsopalmaren Längsschnittes einer Mittelfingerphalanx eines 4monatigen menschlichen Fetus. 60mal vergr. Technik Nr. 90, S. 224.
Die verzweigten Bindegewebszellen behalten zum Teil auch späterhin ihre Form als Retikulumzellen bei (sie bilden miteinander anastomosierend ein Plasmodium, in welchem feine, anfangs interzelluläre Bindegewebsfasern entstehen, die sich dann von den Zellen lösend das Stützgerüst des Knochenmarkes darstellen), zum Teil werden diese Bindegewebszellen zu Fettzellen.
Bald ist nun der Markraum durch die Tätigkeit der Osteoblasten mit einer dünnen, allmählich dicker werdenden Knochentapete ausgekleidet; die oben erwähnten, zackigen Blätter verkalkter Knorpelgrundsubstanz sind rings von jungem Knochen umgeben. So wird nach und nach das früher solide Knorpelstück in spongiösen Knochen umgewandelt, dessen Bälkchen noch Reste verkalkter Knorpelgrundsubstanz enthalten (Fig. 132).
An diesen Resten verkalkter Knorpelsubstanz läßt sich enchondral entstandener Knochen mit Sicherheit von perichondral gebildetem unterscheiden. Ebenso wie bei den Bindegewebsknochen bewirkt auch hier die vorzugsweise innen (s. Fig. 128) stattfindende Resorption den Schwund der anfangs gebildeten Knochensubstanz; dieser Resorption fallen in erster Linie die enchondral gebildeten Knochenspangen zum Opfer.
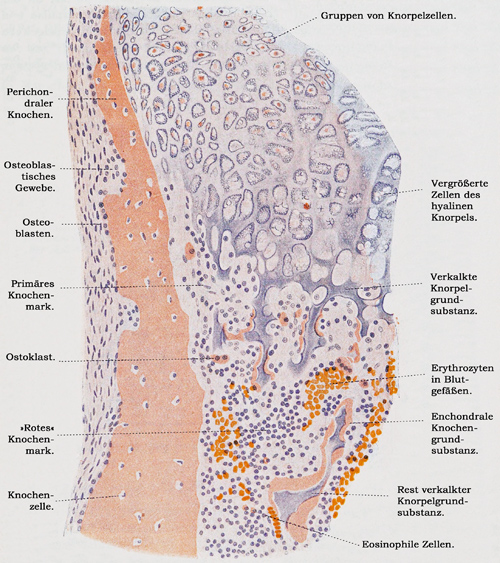
Fig. 131.
Stück eines dorsopalmaren Längsschnittes der zweiten Fingerphalanx eines 4monatigen menschlichen Fetus. 230mal vergr. Im enchondralen Knochen fehlen noch Knochenhöhlen mit Knochenzellen. Technik Nr. 90, S. 224.
Aus dem Knorpelstücke ist durch Auflösung des Knorpels und durch Ersatz desselben durch Knochen (enchondrale Ossifikation), sowie durch Auflagerung neuer Knochenmassen von außen (perichondrale Ossifikation), ein Knochen geworden.
Das Wesen der vorstehend beschriebenen Prozesse besteht in einer Auflösung des ursprünglich knorpligen Skelettstückes und in einer Neubildung desselben durch Entwicklung von Knochensubstanz. Man nennt diesen Modus der Knochenbildung den neoplastischen Typus. An der Gelenkgrube des Schläfenbeins, an der Gaumennaht, am Unterkiefer, an der Tuberositas radii, der Spina scapulae und an den Spitzen der Endphalangen findet man Stellen, an denen Knorpelgewebe in Knochengewebe direkt überzugehen scheint (Fig. 133). Man hat daraus den Schluß gezogen, daß hier eine direkte Umwandlung von Knorpelgrundsubstanz in Knochengrundsubstanz, von Knorpelzellen in Knochenzellen stattfindet und hat diesen Prozeß den metaplastischen Typus genannt. Der Schluß ist unberechtigt, es handelt sich hier nicht um Umwandlung einer ausgebildeten Knorpelzelle in eine Knochenzelle, sondern um Leistungen indifferenter Bildungen des Periosts, die zeitweise Knorpel, zeitweise Knochen liefern (s. auch S. 111). Knochen, die einen metaplastischen Typus zeigen, sind in ihrer ersten Anlage entweder perichondrale oder Bindegewebsknochen.
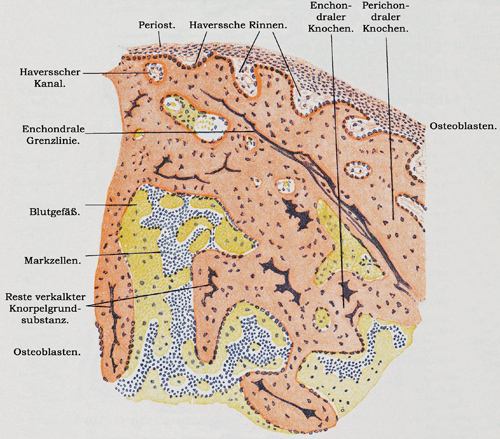
Fig. 132.
Stück eines Querschnittes der Humerusdiaphyse eines 4monatigen menschlichen Fetus. 80mal vergrößert. Technik Nr. 90, S. 224. (Die dunkelroten Linien unter den Osteoblasten sind unverkalkte Knochengrundsubstanz.)
Weiteres Wachstum der knorpelig vorgebildeten Knochen.
a) Röhrenknochen. Viel später als die Verknöcherung der Diaphyse beginnt diejenige der Epiphysen. So entsteht im Humerus der Ossifikationspunkt in der Diaphyse in der 8. Fetalwoche, in den Epiphysen im ersten Lebensjahre. Blutgefäße wachsen in den verkalkenden Knorpel, welcher anfangs nur auf dem Wege der enchondralen, später auch der perichondralen Ossifikation zu Knochen umgewandelt wird. Knorpelig bleiben nur 1. immer, die Oberfläche als Gelenkknorpel, 2. vorübergehend bis zu vollendetem Wachstum eine zwischen Diaphyse und Epiphyse bestehende Zone, die Epiphysenfuge; hier findet ein lebhaftes Wachstum des Knorpels statt, der durch Ausdehnung der primordialen Markräume der Diaphyse und der Epiphysen fortwährend in Knochen umgewandelt wird. Auf diese Weise wächst der Knochen in die Länge. Das Dickenwachstum geschieht durch Auflagerung, „Apposition“, immer neuer periostaler Knochenschichten.
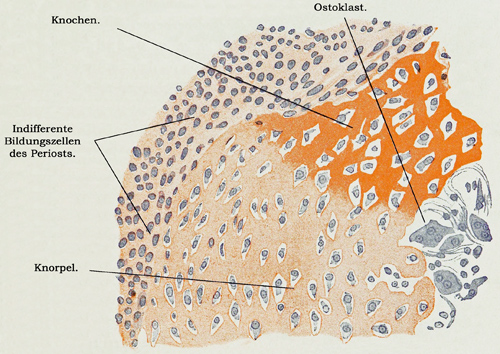
Fig. 133.
Stück eines Schnittes durch den harten Gaumen einer neugeborenen Katze. 240mal vergrößert. Technik Nr. 90, S. 224.
Ein „interstitielles“, durch Vermehrung der zwischen den Knochenhöhlen befindlichen Grundsubstanz bedingtes Wachstum kommt nur in ganz geringem Grade bei jüngster Knochensubstanz vor. Hier liegen die Knochenzellen viel dichter als in späteren Stadien.
b) Kurze Knochen ossifizieren wie die Epiphysen anfangs nur enchondral; erst nach Auflösung der letzten oberflächlichen Reste von Knorpelsubstanz wird eine perichondrale Knochenrinde gebildet.
c) Bei platten Knochen beginnt die Verknöcherung erst perichondral, dann enchondral.
Beim Erwachsenen besteht also das Skelett zum überwiegenden Teil aus Knochensubstanz; Knorpel ist nur an Verbindungsflächen von Knochen, am häufigsten als Angrenzung gegen Gelenke erhalten geblieben.
Die Gelenke bilden sich schon zu einer Zeit aus, wo das gesamte Skelett noch vorwiegend knorpelig ist (s. u. S. 220).
Die zum Aufbau der Eingeweide gehörigen, im Respirationstraktus reichlich vorkommenden Knorpel werden dort besprochen.
Die Knochen.
Durchsägt man einen frischen Röhrenknochen, so sieht man ohne weiteres, daß das Gefüge seiner Diaphyse nicht allenthalben das gleiche ist. Die Hauptmasse der Peripherie stellt eine sehr feste, harte, anscheinend gleichartige Substanz dar; wir nennen diese „Substantia compacta“; gegen die axiale Höhle des Knochens finden wir dagegen feine Knochenblättchen und -bälkchen, die in den verschiedensten Richtungen zusammenstoßend ein unregelmäßiges Maschenwerk bilden; dieses heißt Substantia spongiosa. Die axiale Höhle des Knochens sowie die Maschen der Substantia spongiosa sind mit einer weichen Masse, dem Knochenmarke, ausgefüllt; die Oberfläche des Knochens wird von einer faserigen Haut, dem Periost, überzogen. Die Epiphysen dagegen und die kurzen Knochen bestehen vorwiegend aus spongiöser Substanz, während die kompakte Substanz nur auf eine schmale Zone an der Peripherie beschränkt ist. Platte Knochen haben bald dickere, bald dünnere Rinden kompakter Substanz, während das Innere von spongiöser Substanz erfüllt wird.
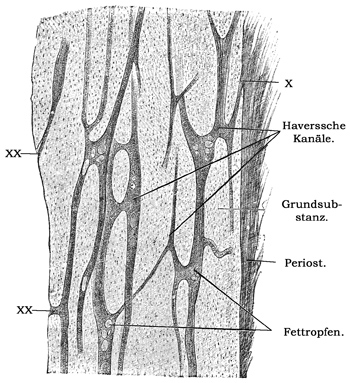
Fig. 134.
Stück eines Längsschnittes durch einen Metakarpalknochen des Menschen. 30mal vergr. Im Präparate sind in den Haversschen Kanälchen Fettropfen zu sehen. Bei × münden die Haversschen Kanäle auf die äußere, bei × × auf die innere Oberfläche des Knochens. Technik Nr. 92, S. 226.
Die Substantia spongiosa besteht nur aus Knochengewebe (S. 112), die Substantia compacta enthält dagegen außer den bekannten Knochenkanälchen und -höhlen ein zweites System gröberer, 22-110 µ weiter Kanäle, welche sich ab und zu dichotomisch teilen und ein weitmaschiges Netzwerk bilden. Die gröberen Kanäle enthalten die Blutgefäße und heißen die Haversschen Kanäle. Ihre Verlaufsrichtung ist in den Röhrenknochen, in den Rippen, im Schlüsselbeine und im Unterkiefer eine der Längsachse des Knochens parallele; in kurzen Knochen wiegt eine Richtung vor, z. B. bei Wirbelkörpern die senkrechte; in platten Knochen endlich verlaufen die Haversschen Kanäle der Oberfläche der Knochen parallel, nicht selten in Linien, die von einem Punkte sternförmig ausstrahlen, z. B. am Tuber parietale. Die Haversschen Kanäle münden an der äußeren (Fig. 134 ×), wie inneren (Fig. 134 × ×), gegen die Substantia spongiosa gekehrten Fläche frei aus.
Die Lamellen des kompakten Knochengewebes lassen nach ihrem Verlaufe drei, durch reichlichere Kittsubstanz („Kittlinien“) scharf voneinander getrennte Systeme (Fig. 136) unterscheiden; ein System konzentrisch um die Haversschen Kanäle angeordneter Lamellen, sie erscheinen an Querschnitten als eine Anzahl (8-15) konzentrisch um den Haversschen Kanal gelegter Ringe. Man nennt diese Lamellen die Haversschen oder Speziallamellen. Die Durchschnitte der Haversschen Lamellensysteme stoßen zum Teil aneinander, zum Teil aber werden sie von in anderer Richtung geschichteten Knochenlamellen auseinander gehalten. Wir nennen diese mehr unregelmäßig zwischen den Haversschen Lamellensystemen verlaufenden Lamellen die interstitiellen oder Schaltlamellen; sie hängen mit einem dritten oberflächlichen Lamellensysteme zusammen, das der äußeren Oberfläche des Knochens parallel verläuft: das ist das System der äußeren Grundlamellen (Generallamellen); an der inneren Oberfläche findet man zuweilen ähnlich verlaufende Lamellen, welche innere Grundlamellen heißen. —
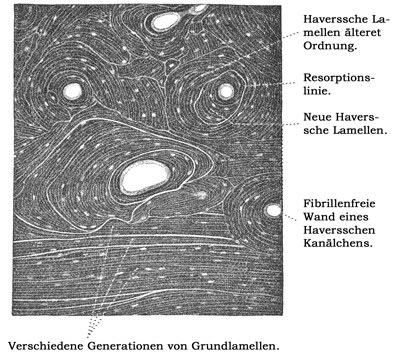
Fig. 135.
Stück eines Schnittes durch eine Fingerphalanx eines Erwachsenen. Färbung der Fibrillen nach S. 39, 11. 80mal vergr. Nur die Fibrillen haben sich geschwärzt, die fibrillenfreie Kittsubstanz erscheint, da wo sie in größeren Mengen vorliegt, als weiße „Kittlinie“. Auch die an das Lumen der Haversschen Kanäle grenzende Knochengrundsubstanz ist hier frei von Fibrillen. Die Fibrillenbündel selbst sind bei dieser schwachen Vergrößerung nicht sichtbar (vgl. dagegen Fig. 66).
Die Richtung der Fibrillenbündel ist dabei sehr wechselnd. Die eine Haverssche Lamelle kann aus senkrecht, die andere aus parallel zur Längsachse der Haversschen Kanäle gestellten Bündeln bestehen; in anderen Fällen bilden die Bündel sich kreuzende Geflechte mit rhomboidalen Maschen, nicht selten endlich ist die Richtung der Bündel in einem Winkel von 20-45° zur Längsachse der Haversschen Kanäle gestellt (Fig. 68). Auch in den Schalt- und Grundlamellen verlaufen die Fibrillenbündel in den verschiedensten Richtungen. (Häufig ist die dem Kanal zunächst liegende Grundsubstanz fibrillenfrei [Fig. 135]).
Die Grundlamellen enthalten in sehr wechselnder Anzahl noch eine andere Art von Gefäßkanälen, welche nicht von ringförmig angeordneten Lamellen wie die Haversschen Kanäle umgeben sind. Man nennt solche Kanäle die „Volkmannschen Kanäle“, die darin enthaltenen Gefäße die „perforierenden Gefäße“. Sie hängen mit den Gefäßen der Haversschen Kanäle vielfach zusammen; der Übergang der Volkmannschen in die Haversschen Kanäle ist ein ganz allmählicher. Die Knochenhöhlen haben in der Substantia compacta ganz bestimmte Stellungen. In den Haversschen Lamellensystemen stehen sie mit ihrer Längsachse der Längsachse der Haversschen Kanäle parallel, der Fläche nach gebogen, so daß sie auf Querschnitten zum Querschnitte des Haversschen Kanales konzentrisch gekrümmt erscheinen. In den interstitiellen Lamellen sind die Knochenhöhlen unregelmäßig, in den Grundlamellen aber derart gestellt, daß sie mit ihren Flächen den Flächen dieser Lamellen gleichlaufen. Die Knochenkanälchen münden sowohl in die Haversschen Kanäle als auch frei an der Außen- bzw. Innenfläche der Knochen.
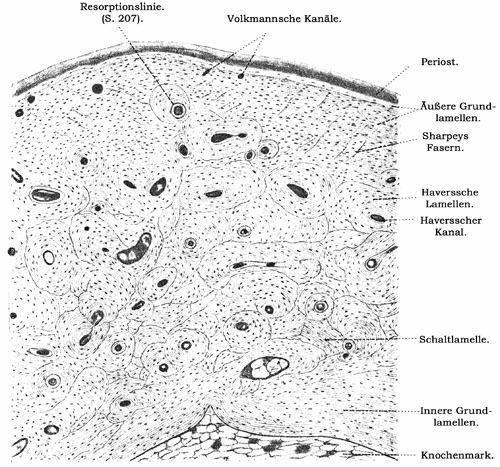
Fig. 136.
Stück eines Querschnittes der Phalanx eines erwachsenen Menschen. Technik Nr. 92, S. 226.
Knochenmark.
Das als Bildungsstätte der Blutzellen besonders wichtige Knochenmark nimmt die axialen Höhlen der Röhrenknochen ein, füllt die Maschen der spongiösen Substanz aus und findet sich selbst noch in größeren Haversschen Kanälen. Es ist in frühester Jugend in allen Knochen von roter Farbe; aber schon im Kindesalter beginnt eine proximalwärts fortschreitende Verfettung des Markes, so daß allmählich alle kurzen und langen Knochen der Extremitäten ein gelbes Mark enthalten; alle Knochen des Stammes und der proximale Abschnitt von Humerus und Femur behalten ihr rotes Mark. Bei alten und kranken Personen wird das Mark schleimig, rötlichgelb und wird dann gelatinöses Knochenmark genannt; es ist lediglich durch seine Armut an Fett charakterisiert.
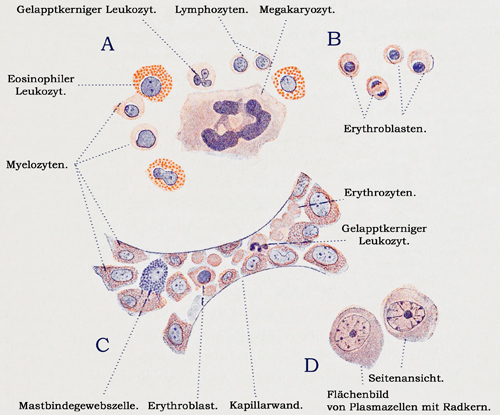
Fig. 137.
Elemente des menschlichen Knochenmarkes, A Femurmark eines 10jähr. Knaben, B aus Durchschnitten durch das Halswirbelmark eines 19jährigen, C des Femur einer 77jährigen, D Rippenmark einer 59jährigen. 900mal vergrößert. D nach Technik Nr. 93b, S. 226.
Das Knochenmark besteht aus Bindegewebe und Zellen. Das Bindegewebe ist an den Wänden der großen Markhöhlen zu einer dünnen Haut, dem Endost, entwickelt, das aus feinen Bindegewebsbündeln, die auch sonst im Markraum ausgespannt sind, besteht; im spongiösen Markraume dagegen fehlen die Bündel fast völlig; elastische Elemente sind überhaupt nicht vorhanden.
Die wichtigsten Markzellen sind: 1. feinkörnige, 2. grobkörnige Hämoleukozyten und 3. Erythroblasten. 1. Die feinkörnigen Hämoleukozyten lassen unterscheiden a) Myelozyten, Zellen mit großem rundlichem Kerne; sie sind die weitaus zahlreichsten, liegen vorwiegend im Gewebe zwischen den Gefäßen und fehlen völlig in den Arterien; sie sind durch Entwicklung von Granula aus den bei Erwachsenen spärlich vorkommenden granulafreien „Myeloblasten“ (S. 166) hervorgegangen. b) Gelapptkernige Leukozyten, die vorwiegend in den Blutgefäßen liegen. 2. Die grobkörnigen, eosinophilen Hämoleukozyten sind, in geringer Anzahl vorhanden, innerhalb und außerhalb der Gefäße gelegen. Die Vermehrung aller dieser Formen erfolgt durch Mitose aus ebenso beschaffenen Zellen. 3. Die Erythroblasten (schlechter „Hämatoblasten“) sind runde, kernhaltige Zellen mit homogenem, dem der Erythrozyten gleichendem, gelbgefärbtem Zytoplasma, die in ontogenetisch früher Zeit relativ groß sind. Diese „Megaloblasten“ („primäre Erythroblasten“) werden alsbald ersetzt durch kleinere Formen „Normoblasten“ (sekundäre E.), welche dann die noch alleinige Art der Erythroblasten darstellen. Diese haben anfangs ein deutliches Kerngerüst, das aber später pyknotisch (S. 71) wird. Aus ihnen gehen durch mitotische Teilung die Erythrozyten hervor, die anfangs noch einen Kern besitzen, diesen aber bald durch Zerfall in Stücke („Karyorrhexis“ = Kernbruch) und Degeneration im Zellinneren — nach anderen durch Ausstoßung — verlieren, worauf der Erythrozyt die Napfform annimmt. Die sekundären Erythroblasten entstehen hauptsächlich in (nach anderen in der Umgebung von) den Kapillaren der Leber, in geringerem Maße in der Milz. Von der zweiten Hälfte des fetalen Lebens an tritt die Entstehung in den venösen Kapillaren des Knochenmarks immer mehr in den Vordergrund und bleibt beim Erwachsenen fast ausschließlich dort durch das ganze Leben fortbestehen. Die Menge der Erythroblasten schwankt und geht parallel mit der Energie des Blutbildungsprozesses.
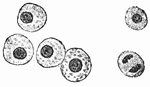
Fig. 138.
Vier primäre, zwei sekundäre Erythroblasten (der untere in Mitose); erstere aus den Dottersackgefäßen eines menschl. Embryo von 8 mm Nackensteißlänge, letztere aus dem Knochenmark eines 19jährigen Hingerichteten. 600mal vergrößert. Technik Zenkers bzw. Müllers Flüssigkeit.
Im Knochenmark kommen ferner vor: sternförmige, ein dem Retikulum lymphatischer Organe ähnliches Gewebe bildende Bindegewebszellen, Fettzellen, Lymphozyten (die kleinen nur in geringer Menge), Plasmazellen, die einen regelmäßigen, oft sehr erheblichen Bestandteil des Knochenmarks bilden, dann Erythrozyten oder Fragmente solcher, oder Pigmentkörperchen einschließende (oft große) Zellen und ganz spärlich, vorzugsweise in der Adventitia der Gefäße gelegene „Mastbindegewebszellen“ (S. 94). Im Knochenmark finden sich endlich Riesenzellen, und zwar a) Megakaryozyten, die einen Kern besitzen, der sehr verschieden gestaltet, bald rund, bald gelappt, band- oder ring- oder netzförmig ist (Fig. 137), und b) Polykaryozyten = Osteoklasten (S. 207), die mehrere, kleine Kerne enthalten (Fig. 133) und im Gegensatz zu den Megakaryozyten stets in der Nähe von Knorpel oder Knochen gelegen sind.
Die außerhalb der Gefäße liegenden Megakaryozyten sind vermutlich Bildungsanomalien von Hämoleukozyten und kommen nur bei Mensch und Säugetier vor. Sie teilen sich beim Menschen wahrscheinlich nur durch pluripolare Mitose (S. 68), und zeigen zuweilen Degenerationserscheinungen am Zytoplasma, die unter Umständen zu völligem Verlust des Zytoplasmas und zur Bildung der sogenannten „Riesenkerne“ führen.
Die Polykaryozyten sind Abkömmlinge der ästigen Bindegewebszellen, nach anderen Autoren aber aus der Wand von Blutkapillaren durch Wucherung des Zytoplasmas, Vermehrung der Kerne ihrer Epithel-(Endothel-)zellen und schließlich Abschnürung vom Mutterboden entstanden. Aus Polykaryozyten sollen durch Abschnürung einer einen Kern enthaltenden Zytoplasmaportion wieder einkernige Zellen entstehen können.
Außen werden die Knochen zum größten Teil durch das Periost umhüllt, dessen Bedeutung in mehreren Richtungen zu suchen ist; einmal ist es die hauptsächlichste Bildungshaut für den Knochen, was im Aufbau der inneren Schichte („Fibroelastika“) zum Ausdruck kommt; sie ist sehr reich an Bindegewebszellen, unter denen die Osteoblasten eine wichtige Rolle spielen.
Die Lebensdauer dieser Zellen ist sehr groß. Das Periost einer Leiche, kühl aufbewahrt, ist noch nach Tagen imstande, Knorpel- und Knochengewebe zu bilden.
Für die Heilung von Knochenwunden ist die Erhaltung dieser inneren Periostschicht maßgebend; nur von ihr kann eine Neubildung von Knochensubstanz ausgehen. In dem Bindegewebe verlaufen auch zahlreiche, der Längsachse des Knochens parallel ziehende, elastische Fasern.
Die äußere Lage des Periostes (Adventitia) ist charakterisiert durch ihren Reichtum an Blutgefäßen und Nerven und stellt die Verbindung mit den am Knochen ansetzenden Sehnen her; im Zusammenhang damit ist diese Lage sehr reich an derben Bindegewebsbündeln.
Das Periost ist bald lockerer, bald fester mit dem Knochen verbunden; die Verbindung wird hergestellt durch die in den Knochen ein- bzw. austretenden Blutgefäße, sowie durch die zahlreichen Sharpeyschen Fasern, Bindegewebsbündel, welche sich in die äußeren Grund- und in die an diese sich anschließenden Schaltlamellen einbohren und nach den verschiedensten Richtungen verlaufen (Fig. 139). An Röhrenknochen dringen als Begleiter vieler Sharpeyschen Fasern elastische Elemente aus der Fibroelastica in den Knochen, wo sie ohne Rücksicht auf die lamelläre Struktur des Knochens in den oberflächlicheren Schichten verlaufen. Auch unabhängig von den Sharpeyschen Fasern eindringende elastische Fasern kommen vor. An den Deckknochen des Schädels fehlen elastische Elemente.
Die Blutgefäße des Knochens, des Markes und des Periosts stehen untereinander in ausgiebigster Verbindung, wie sie auch mit ihrer Umgebung in Zusammenhang stehen. Von den zahlreichen venösen und arteriellen Gefäßen des Periosts treten überall in die Haversschen und Volkmannschen Kanäle kleine Äste (keine Kapillaren) ein, welche an der Innenfläche des Knochens mit den Gefäßen des Markes zusammenhängen. Dieses bezieht sein Blut durch die Arteriae nutritiae, welche auf dem Wege durch die Substantia compacta an diese Äste abgeben und sich im Marke in ein reiches Blutgefäßnetz auflösen. Die Kapillaren des Markes gehen in weite, sehr zartwandige, klappenlose Venen über; von den größeren, ebenfalls klappenlosen Venen verläuft eine mit der Arteria nutritia, während die anderen sich vielfach mit den Venen der kompakten Substanz verbinden. Wirkliche Lymphgefäße finden sich nur in den oberflächlichsten Periostlagen.
Die zahlreichen, markhaltigen und marklosen Nerven sind teils im Periost gelegen, wo sie zuweilen in Lamellenkörperchen endigen, teils treten sie in die Haversschen Kanäle und in das Knochenmark, wo sie hauptsächlich für die Blutgefäße bestimmt sind.
Das die Knochen umgebende Bindegewebe ist es endlich, das den Zusammenhalt zwischen den einzelnen Skeletteilen vermittelt.
Die Verschiedenheit dieser Verbindung hängt mit der abweichenden Entwicklung zusammen, die dieses Bindegewebe schon von einer frühen Bildungsstufe aus durchmacht.
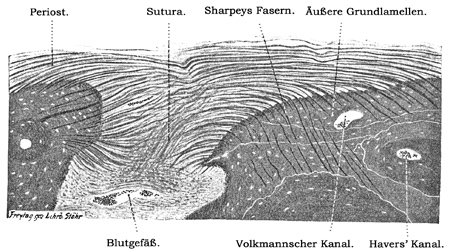
Fig. 139.
Stück eines senkrechten Schnittes durch das Schädeldach (Naht) eines erwachsenen Menschen. 80mal vergr. Nach Technik 11, S. 39.
Schon zu der Zeit, wo fast alle Skeletteile knorpelig sind, entscheidet es sich, ob an einer Stelle später eine Synarthrosis oder eine Diarthrosis vorhanden sein wird. Im letzteren Falle weichen die zwischen den Knorpelstücken liegenden Teile des Perichondriums zur Bildung eines Gelenkhohlraumes auseinander, im ersteren Falle bleibt das Bindegewebe zwischen den Skelettstücken erhalten.
Die Synarthrosis kann sich nun sehr verschieden weiterentwickeln: entweder es entsteht faseriges Bindegewebe (Syndesmosis), wie wir es bei allen Nähten (Fig. 139) ausgebildet finden. Hier ziehen kurze Fasermassen (Fortsetzungen der Sharpeyschen Fasern) von einem gezackten Knochenrand zum andern. Die Verbindung kann aber einen ganz anderen Charakter bekommen, wenn sich in dem Bindegewebe knorpelige Massen ausbilden (Synchondrosis).
In diesen Fällen kann es zu hochkomplizierten Bildungen kommen, wie wir sie in den Ligg. intervertebralia kennen.
Diese bestehen aus einem derben, sehnigen Faserring, in dessen Substanz vielfach Knorpelmassen eingelagert sind; der im Zentrum jeder Zwischenwirbelscheibe liegende Nucleus pulposus (ein Rest der Chorda dorsalis) besteht aus weichem, ebenfalls von Knorpel durchsetztem gallertigem Gewebe.
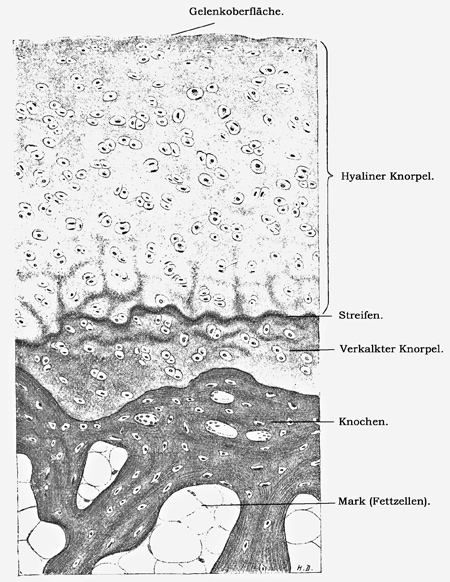
Fig. 140.
Senkrechter Durchschnitt durch das Gelenkende der Fingerphalanx eines erwachsenen Menschen. 100mal vergrößert. Technik Nr. 94, S. 227.
Am wenigsten nachgiebig wird eine Synarthrosis dann, wenn das Bindegewebe zur Knochenbildung schreitet. Dies sehen wir bei vielen Knochen als normales Entwicklungsstadium, wenn mehrere Knochenzentren zur Bildung eines einzigen Skeletteiles miteinander verschmelzen. Im späteren Leben sehen wir besonders am Schädel die Nahtlinien dadurch schwinden, daß das Bindegewebe verknöchert.
In der Diarthrosis ist die Beweglichkeit der Knochen besonders dadurch gesteigert, daß an der Verbindungsstelle der beiden gelenkbildenden Knochen kein Bindegewebsüberzug vorhanden ist, sondern die Skelettteile durch einen von Synovia erfüllten Gelenkspalt voneinander getrennt werden.
In den meisten Gelenken, die zwischen knorpelig vorgebildeten Knochen ausgebildet sind, besitzen die Knochen einen der Gelenkhöhle zugewandten Überzug von hyalinem Knorpel. Hier fehlt ein perichondrialer Überzug, soweit der Knorpel an die Gelenkspalte angrenzt.
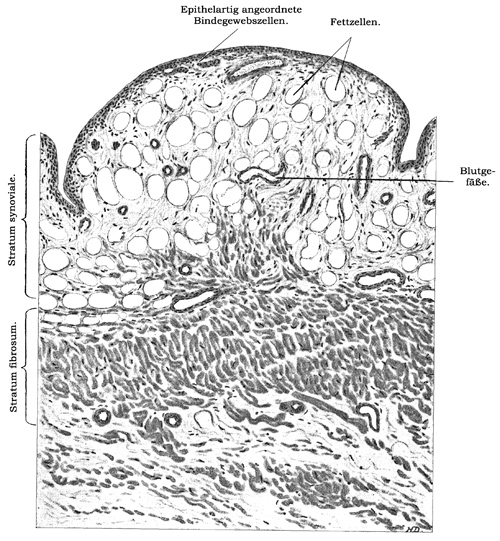
Fig. 141.
Durchschnitt durch die Kapsel des menschlichen Kniegelenkes. 80mal vergrößert. Technik Nr. 95, S. 227.
Die Zellen dieser Gelenkknorpel sind an der Oberfläche parallel dieser gestellt und abgeplattet; in den mittleren Schichten des Knorpels sind die Knorpelzellen rundlich, oft zu Gruppen vereint; in den tiefsten Schichten endlich sind die Zellgruppen teilweise in Längsreihen, senkrecht zur Knochenoberfläche gestellt; daran schließt sich durch einen Streifen getrennt, eine schmale Schicht verkalkten Knorpels, welche die Verbindung zwischen hyalinem Knorpel und Knochen vermittelt (Fig. 140).
An den Gelenkknorpelzellen sind Fortsätze beschrieben worden, welche sich in die benachbarte Knorpelgrundsubstanz hinein erstrecken. Die tieferen Schichten der abgeplatteten Knorpelzellen sollen gelappte Kerne besitzen.
Nicht alle Gelenkknorpel zeigen den eben beschriebenen Bau; so ist der Knorpel der Rippenknorpelgelenke, des Sternoklavikular-, des Akromioklavikulargelenkes, des Kiefergelenkes und des Capitulum ulnae kein hyaliner, sondern Bindegewebsknorpel; die distale Gelenkfläche des Radius ist von straffem Bindegewebe überzogen.
Die Labra glenoidalia und die Zwischenknorpel entbehren der charakteristischen knorpligen Grundsubstanz; sie bestehen aus einem derben Bindegewebe und aus zum Teil rundlichen Zellen.
In die gleiche Kategorie gehören auch die sogenannten Sesamknorpel: die Sehnenscheide am Os cuboideum enthält dagegen echten Knorpel. (Vgl. auch S. 106.)
Nerven und Gefäße fehlen den Gelenkknorpeln Erwachsener: auch die Labra glenoidalia und die Zwischenknorpel sind nerven- und gefäßlos.
Das Periost setzt sich über den Gelenkspalt fort in die Gelenkkapsel, deren äußere Lage vielfach mit verschieden kräftig ausgebildeten, teils mehr sehnigen, teils mehr elastischen (gelben) Bändern in Zusammenhang steht. Auch an Stellen, wo eigentliche Bänder fehlen, ist das Stratum fibrosum mit reichlichem, straffem Bindegewebe ausgestattet (Fig. 141).
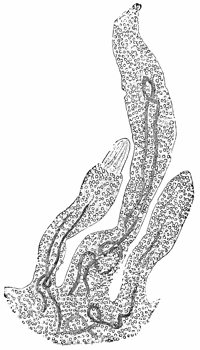
Fig. 142.
Synovialzotten mit Blutgefäßen aus dem menschlichen Kniegelenke. 50 mal vergr. An der Spitze der linken Zotte ist das Epithel abgelöst, so daß das Bindegewebe zum Vorschein kommt. Technik Nr. 96, S. 227.
Die innere Schichte der Gelenkkapsel, das Stratum synoviale (Synovialmembran) ist eine an der freien Innenfläche glänzend glatte Haut und besteht zunächst der fibrösen Schicht aus lockerem, elastische Fasern und stellenweise Fettzellen enthaltendem Bindegewebe; weiter nach innen folgt eine dünne Schicht parallel verlaufender Bindegewebsbündel, welche in der gegen die Gelenkhöhle gekehrten Schicht kleine (11-17 µ), rundliche oder sternförmige, einen großen Kern besitzende Zellen enthalten; letztere sind bald nur spärlich vorhanden — an Stellen, wo größerer Druck ausgeübt wird, — bald sind sie sehr reichlich und bilden förmliche Epithel(Endothel-)lagen, die in drei- bis vierfacher Schicht die Innenfläche decken.
Das Stratum synoviale (Synovialmembran) bildet oft frei in die Gelenkhöhle hineinragende, fetterfüllte Falten und trägt auf seiner Oberfläche die Synovialzotten (Fig. 142); das sind sehr verschieden gestaltete Fortsätze von meist mikroskopischer Größe, welche vorzugsweise dicht am Rande der Gelenkflächen sitzen und der Synovialmembran ein rötlich samtartiges Aussehen verleihen. Sie bestehen aus Bindegewebe und werden von einer einfachen oder doppelten Lage von Epithelzellen überzogen.
Die größeren Blutgefäße der Synovialmembran liegen in der lockeren Bindegewebslage; von da aus ziehen Kapillaren in die innere, dünne Bindegewebslage und dringen in die Zotten ein. Doch gibt es auch gefäßlose Zotten. Lymphgefäße liegen dicht unter dem Epithel.
Die Nerven liegen in der lockeren Bindegewebsschicht und enden zum Teil in Lamellenkörperchen (siehe „Endkolben“).
Die Synovia, Gelenkschmiere, enthält mehr oder weniger stark veränderte Zellen, Zellfragmente und Fettropfen, alles Produkte eines physiologischen Abnutzungsprozesses der Oberflächen des Stratum synoviale und des Gelenkknorpels; ferner Eiweiß, Schleim, Salze; diese festen Bestandteile betragen nur 6%, der Rest besteht aus Wasser.
Technik.
Nr. 90. Zu Präparaten über Knochenentwicklung sind menschliche Embryonen aus dem 4.-6. Monat und tierische Embryonen, Schaf, Schwein oder Rind von 10-14 cm Länge (von der Schnauzenspitze bis zur Schwanzwurzel gemessen) geeignet. Letztere sind leicht aus Schlachthäusern zu beschaffen. Man bestelle sich die ganzen Uteri („Tragsäcke“). Man lege von menschlichen Embryonen einzelne Stücke, von Tieren die ganzen Embryonen (2-3 Stück in 1 Liter) in Zenkersche Flüssigkeit auf 48 Stunden. Dann lege man dieselben eben so lange in (womöglich fließendes) Wasser und härte sie in 200-400 ccm allmählich verstärktem Alkohol (S. 17). Nachdem die Embryonen 1 Woche oder länger in 90%igem Alkohol gelegen haben, schneide man den Kopf, die Extremitäten dicht am Rumpfe ab und entkalke sie (S. 18). Stücke der Wirbelsäule, Rippen, geben ebenfalls instruktive Bilder. Nach 2-5 Tagen, während welcher man die Entkalkungsflüssigkeit etwa 3mal gewechselt hat, werden die Extremitäten herausgenommen (der Kopf wird noch nicht ganz entkalkt sein und muß noch einige Tage in der Salpetersäure liegen bleiben), und nach § 6 (S. 18) weiter behandelt.
Zu Präparaten über die ersten Vorgänge der Knochenentwicklung (Fig. 129 bis 151) mache man von der Beugeseite zur Streckseite gerichtete (sagittale) Längsschnitte durch die in Zelloidin eingebetteten Phalangen und die (bei den genannten Tieren sehr langen) Metakarpen; gute Schnitte müssen die Achse der Extremitäten treffen, Randschnitte geben unklare Bilder.
Für vorgeschrittene Stadien mache man vorzugsweise Querschnitte durch Humerus und Femur. Schnitte durch die Diaphyse liefern mehr perichondralen, Schnitte durch die Epiphysen mehr enchondralen Knochen.
Die schönsten Osteoblasten erhält man an Unterkieferquerschnitten, die auch zu Präparaten über Zahnentwicklung zu verwerten sind.
Für noch spätere Stadien sind Skelettstücke neugeborener Tiere zu verwenden, deren Phalangen zum Teil noch ziemlich frühe Vorgänge erkennen lassen. Die Karpalknochen zeigen noch die ersten Anfänge. Die Entkalkung nimmt hier etwas mehr Zeit (bis 8 Tage) in Anspruch.
Für Bindegewebsknochen mache man Flachschnitte durch Scheitel- und Stirnbein der Embryonen.
Sämtliche Schnitte werden vom Sublimat befreit durch Jodalkohol (S. 16), auf 2-10 Minuten in ca. 4 ccm Hansensches Hämatoxylin (S. 32) eingelegt, auf 10 Minuten in ca. 10 ccm destilliertes Wasser übertragen, dann 1 Minute lang in ca. 4 ccm Eosin (S. 41) gefärbt, auf 2 Minuten in ca. 5 ccm destilliertes Wasser gebracht und in Xylolbalsam (S. 45) konserviert.
Ist die Färbung gelungen, so sind Knorpel (besonders die verkalkten Partien) blau, Knochen rot. Zuweilen färbt sich der Knorpel nicht lebhaft blau, alsdann lege man die Schnitte anstatt in die gewöhnliche Hämatoxylinlösung in 5 ccm destilliertes Wasser + 5 Tropfen der filtrierten Hämatoxylinlösung. Nach 6 bis 14 Stunden wird der Knorpel blau sein. Die Eosinfärbung des Knochens ist oft nicht gleichmäßig, die jüngsten, unverkalkten Knochenpartien, z. B. die Ränder der Knochenbälkchen, sind in bald hellerem, bald dunklerem Tone gefärbt.
Nr. 91. Knochenschliffe. Die zu Schliffen zu verwendenden Knochen dürfen nicht vor der Mazeration getrocknet sein, sondern müssen frisch auf mehrere Monate in Wasser, das mehrmals gewechselt wird, eingelegt werden. Dann werden sie getrocknet, die Knochen müssen dann rein weiß sein; zeigen sich dagegen noch gelbliche, durchsichtige Stellen — die Zeichen unvollkommener Entfettung — so müssen die zu schleifenden Stückchen in Xylol im Warmen entfettet werden. Vgl. auch Schaffer, „Methodik der histolog. Unters. d. Knochengewebes“. Zeitschr. f. wissensch. Mikroskopie Bd. X. Ein Stück wird zwischen zwei Korkstücke oder zwischen Tuch in einen Schraubstock geklemmt und mit einer Laubsäge ein 1-2 mm dickes Blatt der Quere bzw. der Länge nach abgeschnitten. Das Blatt wird mit Siegellack auf die Unterfläche eines Korkstöpsels fest angeklebt (der Siegellack muß das Blatt rings umgeben), das Ganze einen Moment in Wasser getaucht und dann zuerst mit einer flachen, groben und nachher mit einer feinen Feile ganz eben gefeilt; dabei muß die Feile öfter in Wasser getaucht werden, um die ihr anhängenden Teile abzuspülen und um die Erwärmung des Siegellackes durch die Reibung zu verhindern. Dann löst man durch Erwärmen des Siegellackes das Knochenblatt ab und klebt es mit der anderen, geebneten Seite auf den Stöpsel. Jetzt wird das Blatt mit der Feile so lange bearbeitet, bis es so dünn geworden ist, daß der Siegellack durchscheint. Alsdann bringt man das Ganze in 90%igen Alkohol, wo sich binnen weniger Minuten das Knochenblatt leicht ablösen läßt. Nun nimmt man einen groben Schleifstein, befeuchtet ihn mit Wasser, stellt durch Reiben mit einem zweiten Schleifstein etwas Schmirgel her, legt das Knochenblatt hinein und schleift es auf beiden Seiten in kreisförmiger Bewegung, indem man einen glatten (keine Risse tragenden) Korkstöpsel einfach auf das Knochenblatt aufsetzt; ein Ankleben des Blattes ist nicht nötig. Hat der Schliff die nötige Dünne erreicht — man überzeuge sich davon, indem man ihn zwischen Filtrierpapier abtrocknet und dann bei schwacher Vergrößerung betrachtet, der Schliff muß durchsichtig sein —, so glättet man ihn auf einem feinen Schleifsteine (die Manier ist dieselbe wie das Schleifen auf dem groben Steine) auf beiden Seiten, trocknet ihn dann mit Filtrierpapier ab und poliert ihn. Zu letzterem Zwecke nagele man ein Stückchen Rehleder (Waschleder) glatt auf ein Brett, bestreiche das Leder mit Kreide und reibe den mit etwas Speichel an die Fingerspitze geklebten Schliff auf und ab. Der bisher matte Schliff wird dadurch eine glänzende Oberfläche erhalten. Zuletzt entferne man die anhaftende Kreide durch Streichen auf reinem Waschleder. Der fertige Schliff wird trocken unter ein Deckglas gebracht, welches man mit Kitt (S. 44) umrahmt.
Betrachten zuerst mit schwachen, dann mit starken Vergrößerungen. Ist der Schliff zu dick, so ist oft die Betrachtung mit starken Vergrößerungen unmöglich, da das Objektiv nicht nahe genug auf das Präparat gebracht werden kann. Die Knochenhöhlen und Knochenkanälchen sind mit Luft erfüllt, welche bei der üblichen Beleuchtung der Objekte von unten her schwarz erscheint (Fig. 69, S. 115).
Nr. 92. Für Haverssche Kanälchen und Knochenlamellen mache man Längs- und Querschnitte durch Knochen, welche man, nach vorhergegangener vierwöchiger Fixierung mit Müllerscher Flüssigkeit und Härtung mit Alkohol (s. S. 17), in 3%iger Salpetersäure entkalkt (S. 18) und dann wieder gehärtet hat. Man wähle dazu einen Metakarpalknochen eines völlig erwachsenen Individuums; kompakte Stücke größerer Knochen (z. B. des Femur) erfordern zu lange Zeit (mehrere Wochen) zur Entkalkung. Das Periost lasse man am Knochen sitzen. Für Längsschnitte der Haversschen Kanäle müssen sehr dicke (0,5 mm und mehr) Schnitte angefertigt werden; Konservieren in Xylolbalsam (nach § 10,3 S. 45) und Betrachten bei schiefer Beleuchtung (S. 50) liefert instruktive Bilder (Fig. 134). Für Querschnitte und Lamellensysteme braucht man ebenfalls keine sehr dünnen Schnitte; die Lamellen sieht man am besten, wenn man den Schnitt in einigen Tropfen destillierten Wassers betrachtet und den Spiegel so dreht, daß das Objekt nur halb beleuchtet ist; dann sieht man auch die von den Knochenkanälchen herrührenden, feinen Streifen, die senkrecht zu den Lamellen verlaufen. Man konserviere in verdünntem Glyzerin, das indessen die Lamellensysteme teilweise undeutlich macht. Nicht jede Stelle des Knochens zeigt sämtliche Lamellensysteme; so fehlen häufig die äußeren und auch die inneren Grundlamellen; macht man Schnitte nahe den Epiphysen, so sieht man, wie sich die kompakte Substanz in die Bälkchen der Substantia spongiosa fortsetzt. Die Knochenhöhlen und Knochenkanälchen sind an feuchten Präparaten viel weniger deutlich als an trockenen Schliffen, weil die Konservierungsflüssigkeit die in ihnen enthaltene Luft herausgedrängt hat. Vgl. Fig. 69 und 70 (S. 115) miteinander. Für feinere Schnitte bette man in Zelloidin ein.
Nr. 93. Rotes Knochenmark. a) Man quetsche einen aus dem Schlachthaus bezogenen halbierten Wirbel oder eine Rippe eines Kalbes in einem Schraubstock oder mit einer Zange, sauge von der an der Schnittfläche herausgepreßten Flüssigkeitsmenge mit einer Pipette einen kleinen Tropfen ab, der auf den Objektträger gebracht, ohne Zusatz mit einem kleinen Deckglase oder besser mit einem Bruchstückchen eines solchen bedeckt wird. Untersucht man dann mit starker Vergrößerung, so sieht man rote Blutzellen, Erythroblasten, Markzellen in verschiedener Größe und Riesenzellen, aber nicht immer deren Kerne. Nun läßt man einen Tropfen Pikrokarmin zufließen (S. 48); die Kerne werden schon nach 1 bis 2 Minuten rot, sind aber noch blaß. Ersetzt man das Pikrokarmin erst durch Kochsalzlösung, und dann durch verdünntes, angesäuertes Glyzerin (S. 48), so werden die Kerne dunkel, scharf konturiert. Zuweilen sucht man vergeblich nach Riesenzellen.
b) Für Dauerpräparate kann man mit einem dünnen Deckglase einen Tropfen des aus einer Rippe ausgepreßten Markes abheben und in der gleichen Weise wie Nr. 64 (S. 195) behandeln, besser aber ist Fixation eines aus Femur oder Tibia herausgeschnittenen kleinen Markstückchens in Müllerformol usw. (S. 16). Handelt es sich um Untersuchung der Granulationen, dann sind sehr feine 2-4 µ dicke Mikrotomschnitte des in Paraffin eingebetteten Objektes nötig. Die Entkalkungsprozedur, die nach der Fixierung eventuell vorgenommen wird, schädigt die Granula. Färbung entweder nach der für das Blut vorgeschriebenen Methode (Nr. 101) oder mit Hämatoxylin und Eosin. Anwendung starker Vergrößerung (Immersion) ist unentbehrlich; Schnitte haben vor Strichpräparaten den großen Vorzug der Erhaltung der topographischen Verhältnisse.
Nr. 94. Zu Schnitten des Gelenkknorpels wähle man Metakarpalköpfchen oder Phalangen erwachsener Individuen, die nach der Nr. 91 angegebenen Methode behandelt werden. Man fertige Längsschnitte an, welche in verdünntem Glyzerin konserviert werden (Fig. 140). Die im hyalinen Knorpel oft vorhandenen, parallelen Streifen rühren vom Messer her. Die Körnchen des verkalkten Knorpels sind durch die Entkalkung verschwunden.
Nr. 95. Gelenkkapsel vom Kniegelenk oder anderen größeren Gelenken konserviere man in Müllerformol, bette in Zelloidin ein, färbe die Schnitte mit Hansenschem Hämatoxylin (S. 32) und Eosin (S. 41).
Nr. 96. Synovialzotten. Man schneide von einer möglichst frischen Leiche am Rande der Kniescheibe ein Stückchen der Gelenkkapsel von ca. 4 cm Seite aus, trage von der rötlich glänzenden, samtartigen Innenfläche desselben mit der Schere einen 2-3 mm breiten Streifen ab, den man, mit einem Tropfen Kochsalzlösung befeuchtet, ohne Deckglas mit schwacher Vergrößerung betrachtet. Am Rande des Streifens bemerkt man die Zotten, deren Blutgefäße oft noch Blutzellen enthalten; die glänzenden Kerne der Epithelzellen liegen dicht beieinander (Fig. 142). Will man das Präparat konservieren, so färbe man unter dem Deckglase mit Pikrokarmin und konserviere mit verdünntem Glyzerin (S. 41), doch geht viel von der ursprünglichen Schönheit verloren.
III. Organe des Nervensystems.
Die Elemente des Nervengewebes und der Glia sind vielfach unter Anteilnahme von Bindegewebe zu kleineren und größeren Einheiten zusammengeschlossen, die alle unter sich in Verbindung stehen und die gesamten Bestandteile des Körpers durch ihren regulierenden Einfluß zu einem Organismus gestalten.
Zur mikroskopischen Charakterisierung der Anteile des Nervensystems gehört in erster Linie der Nachweis von Nervenzellen oder Nervenfasern; die letzteren sind oft (besonders in den peripheren Nervenendigungen) nur mit besonderen, schwierigen Methoden zu erkennen.
Eine histologische Schilderung des Nervensystems nach seinem funktionellen Aufbau ist bei dem eigenartigen Zusammenhang seiner Elemente kaum durchführbar; auch würde eine, unsere heutigen Kenntnisse nur einigermaßen berücksichtigende, funktionelle Darstellung weit über den Rahmen dieses Buches hinausgehen. Hier werden deshalb nur die wesentlichen Tatsachen der Zusammensetzung des Nervensystems insoweit berücksichtigt, als sie zur Erkennung pathologischer Abweichungen im Allgemeinen erforderlich sind.
I. Das zentrale Nervensystem gliedern wir in Gehirn und Rückenmark, die aber unmittelbar ineinander übergehen. Wie der Rumpfabschnitt in den meisten Systemen deutlicher als der Kopfabschnitt eine segmentale Gliederung erkennen läßt, so sind auch im Rückenmark Anklänge an eine Segmenteinteilung noch leichter festzustellen als im Gehirn, in dessen Hauptteilen eine Segmentierung fehlt.
Die Segmentierung des Rückenmarkes kommt zwar weniger in seinem äußeren Aufbau zum Ausdruck, wohl aber in dem segmentalen Zusammenhang mit den peripheren Nerven (Wurzeln), der Anordnung der Spinalganglien, sowie in der Anordnung gewisser Zellgruppen in seinem Innern.
Die nervösen Zentralorgane bilden nach ihrer Anlage ein relativ dünnwandiges Rohr, dessen Wandung aus zahlreichen Zellen besteht. Mit der Wandverdickung vermehren sich diese Zellen; gleichzeitig beginnt aber eine Differenzierung, die regelmäßig zur Ausbildung von drei Schichten führt (siehe Fig. 149, S. 239): den Zentralkanal unmittelbar begrenzend 1. die Matrix, 2. aus Zellen bestehend, die der Matrix entstammen, die Mantelzone und 3. der zellfreie Rindensaum. Am fertigen Zentralnervensystem ist nur noch das Ependym als Rest der Matrix aufzufassen; die Gesamtheit der Nervenzellen und des überall verbreiteten Gliaplasmodiums ist aus der Matrix durch Vermittlung der Mantelzone entstanden. Der zellfreie Rindensaum ist im Rückenmark die Anlage der weißen Substanz. Im Gehirn (besonders im Klein- und Großhirn siehe S. 239 u. 245) führen kompliziertere Entwicklungsvorgänge zu mannigfachen Abweichungen.
Rückenmark.
Das Rückenmark besteht aus zwei, schon mit unbewaffnetem Auge unterscheidbaren Substanzen, einer weißen und einer grauen, deren Lagerungsbeziehungen am besten an Querschnitten des Rückenmarks (Fig. 143) erkannt werden können.
Die weiße Substanz enthält fast ausschließlich markhaltige Nervenfasern (daher ihre weiße Farbe) und schließt die graue Substanz rings ein. Sie wird durch einen tiefen vorderen Längsspalt, die Fissura mediana anterior, und ein hinteres „Septum (früher Fiss.) med. post.“ unvollständig in eine rechte und linke Hälfte getrennt. Jede Hälfte zerfällt durch die Austrittsstellen der vorderen und hinteren Nervenwurzeln in einen großen Seitenstrang, in einen Vorder- und einen Hinterstrang. Im unteren Hals- und oberen Brustteile des Rückenmarkes läßt jeder Hinterstrang zwei Abteilungen unterscheiden, von denen die mediale Fasciculus gracilis (Goll), die laterale Fasciculus cuneatus (Burdach) heißt. Die Vorderstränge hängen im Grunde des vorderen Längsspaltes durch die weiße Kommissur (oft schlechthin als Comm. anterior bezeichnet) miteinander zusammen. In dieser Kommissur kreuzen neben anderen Fasern die vom Gehirn herabsteigenden (motorischen) Pyramidenbahnen.
In der weißen Substanz des Rückenmarkes verlaufen im Prinzip drei Arten von Nervenfasern. 1. Die zu peripheren Neuronen gehörigen sensiblen, motorischen und sympathischen Fasern; 2. Fasern, die zu Rückenmarkszellen gehören, die die Neurone verschiedener Rückenmarkssegmente miteinander verbinden; 1. und 2. bilden die faserigen Anteile des „Eigenapparates“; dazu treten aber noch 3. zahllose Fasern, die die Verbindung mit Neuronen herstellen, deren zelligen Anteile im Gehirn liegen. Die letzteren werden auf Querschnitten, die näher dem Gehirne liegen, naturgemäß einen größeren Raum beanspruchen. Daher kommt es, daß die Gesamtmasse der weißen Substanz um so mächtiger wird, je mehr sie sich dem Gehirn nähert. Das macht sich auf Querschnitten des Rückenmarkes an einer absoluten Zunahme der weißen Substanz in kaudo-kranialer Richtung bemerkbar.
Die graue Substanz (ihrer relativen Armut an markhaltigen Fasern wegen weniger weiß erscheinend) enthält fast alle Nervenzellen des Rückenmarkes, ist mikroskopisch ziemlich scharf gegen die umgebende weiße Substanz abgegrenzt und erscheint auf dem Querschnitte in Form eines H, besteht also im ganzen aus zwei seitlichen Säulen, welche durch ein frontal gestelltes Blatt, die graue Kommissur, miteinander verbunden werden. An jeder Säule unterscheiden wir eine dickere Vordersäule (-horn) und eine schlankere Hintersäule (-horn).
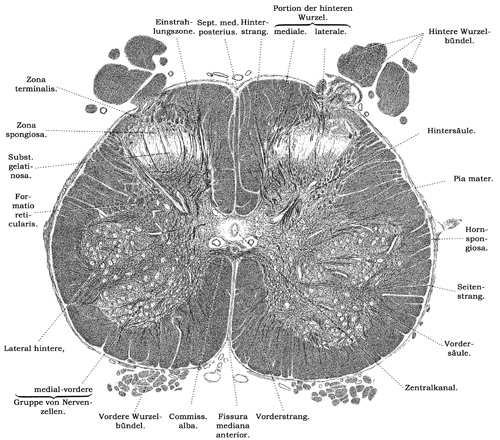
Fig. 143.
Querschnitt der Lendenanschwellung des menschlichen Rückenmarks. 11mal vergr. Technik Nr. 97a, S. 270.
Die Gesamtmasse der grauen Substanz wie ihre Form wechselt in den verschiedenen Höhen des Rückenmarkes nicht unbeträchtlich; die Gesamtmasse ist am größten in den zu den mächtigen Innervationsbezirken der Extremitäten zugehörigen Teilen (Intumescentia cervicalis und lumbalis). Hier ist im Vergleich zum „Brustmark“ das Verhältnis der grauen zur weißen Substanz zugunsten der grauen verschoben. Das Ende des Conus medullaris besteht fast nur aus grauer Substanz. Am lateralen Teile der Vordersäule in gleicher Frontalebene mit dem Zentralkanale findet sich die besonders im oberen Teile des Brustmarkes deutlich ausgeprägte Seitensäule (-horn). Vom vorderen Umfange der Vordersäule entspringen in mehreren Bündeln die im wesentlichen motorischen vorderen Wurzeln, während an der hinteren und medialen Seite der Hintersäule die größtenteils sensiblen hinteren Wurzeln der Spinalnerven eintreten.
In den vorderen Wurzeln wie in den hinteren verlaufen auch sympathische Fasern, die peripher durch die Rami communicantes mit dem Grenzstrang in Verbindung stehen. Ein Teil dieser Fasern entspringt sicher aus den (sympathischen) Zellgruppen der Seitensäule des Rückenmarkes; von anderen kennen wir den Verlauf nicht.
An der lateralen Seite der Hintersäulenbasis findet sich eine aus netzartig verbundenen Balken grauer Substanz gefügte Masse, die Formatio reticularis; an der medialen Seite der Hintersäule, nahe der grauen Kommissur der Dorsalkern (Clarke), der in der ganzen Länge des Brustmarkes und im oberen Teil des Lendenmarkes als gut abgegrenzte Gruppe von Ganglienzellen sichtbar ist, aber auch in den übrigen Partien des Rückenmarkes nicht ganz fehlt. An der Spitze der Hintersäule unterscheidet man eine, besonders makroskopisch gut wahrnehmbare gallertig scheinende Masse, die Substantia gelatinosa (Rolando), dorsalwärts von dieser die schmale Zona spongiosa, an deren dorsalem Rande endlich die Randzone (Zona terminalis), ein Feld quer durchschnittener, feiner Nervenfasern, sich befindet. In dem grauen schmalen Querstück der H-Figur liegt der Querschnitt des das ganze Rückenmark durchziehenden Zentralkanals, welcher von der kaudalwärts an Masse abnehmenden Substantia grisea centralis umgeben ist. Der Zentralkanal ist 0,5 bis 1 mm weit und nicht selten obliteriert. Dorsal und ventral wird er von einer schmalen Lage grauer Substanz bedeckt; dorsal, wo sie faserärmer ist, bezeichnet man sie als Comm. posterior (grisea), ventral tritt sie gegenüber des Comm. anterior (alba) ganz zurück. Von der ganzen Peripherie der grauen Substanz strahlen gröbere oder feinere Fortsätze, die Septula medullaria, in die weiße Substanz.
Feinerer Bau. Wir beginnen hier mit der grauen Substanz, von deren Kenntnis das Verständnis der weißen Substanz abhängt. Die graue Substanz besteht aus multipolaren Nerven-(Ganglien-)zellen, die mit ihren Dendriten und Neuriten ein dichtes Gewirr, den Nervenfilz (Neuropilem) bilden. In diesen Filz treten noch Nervenfasern, die zum Teil von den weißen Strängen, zum Teil von den Hinterwurzeln herkommen; die Neuroglia trägt das Ganze.
1. Die Nervenzellen werden nach dem Verhalten ihres Neuriten eingeteilt in a) motorische Nervenzellen, b) Strangzellen, c) Binnenzellen, d) Bahnzellen; a-c gehören zum „Eigenapparat“ des Rückenmarkes, das heißt dem Teil dieses Organes, der auch bei Ausschaltung höherer Zentren sensible Erregungen in motorische Leistungen umsetzen kann. Die unter d aufgeführten Zellen bewirken dagegen eine Verbindung mit höheren Zentren; ihr Neurit leitet in zentripetaler Richtung. Durch zahlreiche aus dem Gehirn absteigende Bahnen wird der „Eigenapparat“ des Rückenmarkes andauernd reguliert; diese Bahnen verlaufen in der weißen Substanz und gelangen in die graue erst unmittelbar vor der Endaufsplitterung an den Ganglienzellen.
a) Die motorischen Nervenzellen, welche in Gruppen in der Vordersäule liegen.
Man sieht an der Hals- und Lendenanschwellung zwei Gruppen, eine medial-vordere und eine lateral-hintere (vgl. Fig. 142), sie sind im obersten Halsmark und im Brustmark zu einer Kolonie vereint; minder scharf läßt sich noch eine medial-hintere und eine lateral-vordere Gruppe unterscheiden, die beide gleichfalls motorische Zellen enthalten. Auf Längsschnitten (besonders gut bei Amphibien) zeigt sich, daß die Zellgruppen den Ursprungsgebieten der einzelnen Wurzeln entsprechend segmental angeordnet sind.
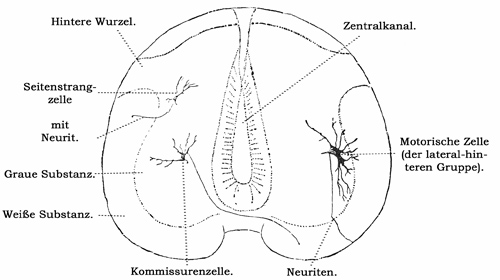
Fig. 144.
Querschnitt durch das Rückenmark eines 7 Tage bebrüteten Hühnerembryo. 80mal vergrößert. Die weiße Substanz ist noch wenig entwickelt, der Zentralkanal noch sehr groß. Technik Nr. 99a, S. 271.
Diese Ganglienzellen besitzen einen großen (67-135 µ) Zellkörper, dessen Nißl-Substanzen ihm das oben (S. 136) geschilderte, getigerte Aussehen verleihen sowie ausgedehnte, weit bis in die Hintersäulen und in die Vorder- oder Seitenstränge reichende Dendriten; ihr Neurit tritt, meist nach Abgabe unbedeutender Seitenzweige („Kollateralen“), gewöhnlich aber ohne diese, an der Spitze der Vordersäule in die weiße Substanz, durchsetzt diese in schräg absteigendem Verlaufe und wird dabei, indem er eine Markscheide erhält, zum Achsenzylinder einer markhaltigen Nervenfaser. Er verläßt als Bestandteil eines vorderen (ventralen) Wurzelfaserbündels das Rückenmark. Alle (nach anderen Autoren nur die Mehrzahl) vorderen Wurzelfasern entspringen aus den motorischen Vordersäulenzellen, und zwar aus denen derselben, nicht der entgegengesetzten Seite (Fig. 144).
Mit den vorderen Wurzeln verlassen höchstwahrscheinlich auch die Neuriten etwas kleinerer, ebenfalls multipolarer Nervenzellen, deren Summe man als Nucleus sympathicus lateralis (an der Kante der Seitensäule gelegen) bezeichnet.
b) Die Strangzellen (Fig. 145) bilden die Hauptmasse der Nervenzellen der grauen Substanz und liegen in dieser überall (mit Ausnahme der von den motorischen Nervenzellen eingenommenen Stellen) teils zerstreut, teils in Gruppen (wahrscheinlich in allen Teilen des Querschnittes). Die Strangzellen sind ein wichtiges Glied in der Reizübertragungskette im Rückenmark, indem sie einerseits unter dem Einfluß der peripheren sensiblen Neurone stehen, andererseits durch ihre verzweigten Neuriten mit einer größeren Anzahl von motorischen Neuronen beider Seiten verbunden sind. Durch ihre Vermittlung können auf einen lokalen Reiz hin eine große Anzahl motorischer Neurone erregt werden. Die Strangzellen sind meist kleiner, wie die motorischen Nervenzellen und besitzen wenige, schwach verästelte, aber weit ausgestreckte Dendriten. Ihr Neurit tritt, nachdem er noch in der grauen Substanz viele Kollateralen abgegeben hat, in die weiße Substanz (in den Vorder- oder Seitenstrang, sehr selten in den Hinterstrang), und zwar entweder derselben („homolaterale Zellen“) oder der entgegengesetzten Seite („kontralaterale Zellen“). Zellen der letzteren Art hat man auch Kommissurenzellen genannt, weil ihr Neurit die vordere Kommissur durchsetzt, ehe er in die weiße Substanz eintritt.
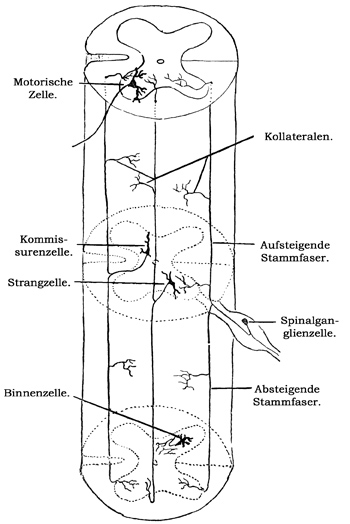
Fig. 145.
Schema der Lage und Verästelung der Nervenzellen, sowie der hinteren Wurzeln des Rückenmarks.
Die Kommissurenzellen nehmen ein Feld ein, welches den Zentralkanal von der ventralen Seite her bogenförmig umfaßt; dort sind sie von besonderer, den motorischen Vordersäulenzellen nahekommender Größe. Auch weiter hinten, im mittleren Abschnitt der grauen Substanz finden sich noch zerstreute Kommissurenzellen, dagegen fehlen sie in der Hintersäule.
In der weißen Substanz angelangt, teilt sich der Neurit der meisten Strangzellen in eine vertikal auf- und absteigende „Stammfaser“, die während ihres parallel der Rückenmarklängsachse gerichteten Verlaufes Seitenäste (Kollateralen) abgibt, welche wieder in die graue Substanz einbiegen und hier frei verästelt enden; auch die Stammfasern selbst enden schließlich wie eine Kollaterale. Die vom Vorderstrang eintretenden Kollateralen dringen einzeln oder bündelweise in die Vordersäule, wo sie die großen motorischen Zellen umspinnen, besonders zahlreich sind sie im lateral-vorderen Bezirk der Vordersäule; nicht weniger zahlreich sind die vom Seitenstrang herkommenden Kollateralen. Beim Erwachsenen sind die Neuriten aller Strangzellen mit einer Markscheide umgeben.
Es gibt auch noch andere Strangzellen, deren Neurit in die weiße Substanz tritt und dort ohne Teilung auf- oder abwärts umbiegt. Unter dem Namen „plurifunikuläre Zellen“ sind Strangzellen beschrieben worden, deren Neurit in der grauen Substanz sich in 2 oder 3 Äste teilt, die sich in ebensoviele Fasern verschiedener Stränge fortsetzen.
c) Die Binnenzellen, die die graue Substanz nicht überschreiten, besitzen ganz kurze, sich rasch verästelnde Neuriten; sie kommen in den Hintersäulen vor (Fig. 145), wo ihre Endverästelung sich entweder auf derselben oder auf der entgegengesetzten Rückenmarkshälfte ausbreitet.
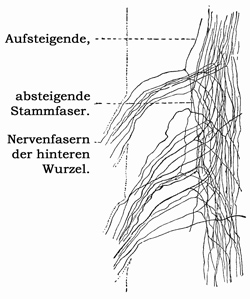
Fig. 146.
Stück eines Längsschnittes des Rückenmarkes einer neugeborenen Ratte. 110mal vergr. Der Schnitt hat zwei hintere Wurzeln getroffen. Kollateralen sind nicht zu sehen. Technik Nr. 99a, S. 271.
d) Die Bahnzellen, deren Neurit in frontaler Richtung aufsteigt, die Erregung also von sensiblen, peripheren Neuronen in frontalere Zentren weiterleitet. Unter ihnen sind diejenigen der Clarkeschen Säulen (s. S. 230) am besten bekannt. Ihr Neurit zieht dem Kleinhirn zu.
2. Die Nervenfasern stammen, soweit sie aus den Vorder- und Seitensträngen hereintreten, zu einem Teil von den markhaltigen Kollateralen und Enden der Strangzellen-Neuriten, zum anderen Teil von (ebenfalls eine Markscheide besitzenden) Neuriten, die vom Gehirn kommen[99]. Dazu kommen noch die markhaltigen Nervenfasern der hinteren (dorsalen) Wurzeln, welche von den zentripetalen Fortsätzen der Spinalganglienzellen (S. 139) abstammen. Diese hinteren Wurzelfasern treten in das Rückenmark in zwei Gruppen ein, eine laterale — sie verläuft in der Randzone — und eine stärkere, mediale, welche im Hinterstrang verläuft. Jede dieser Fasern senkt sich von da nicht direkt in die graue Substanz, sondern teilt sich zuerst y-förmig in eine längere aufsteigende und eine kürzere absteigende Stammfaser (Fig. 146), von welchen unter rechtem Winkel viele Kollateralen entspringen (Fig. 145). Erst diese treten in die graue Substanz ein und verteilen sich mit ihren Endverästelungen fast über alle Punkte der grauen Substanz. Von der lateralen Wurzelfasergruppe endet ein Teil in der Hintersäulenspitze und bildet dort einen sehr feinfaserigen, dichten Plexus; ein zweiter Teil liegt in der Substantia gelatinosa (Fig. 147c); von der medialen Gruppe endet ein Teil im Dorsalkern (Clarke) (Fig. 147a); hier reichen die Markscheiden weiter als sonst, d. h. bis zu den letzten Endverästlungen. Ein anderer Teil, welcher den medialen Abschnitt der Substantia gelatinosa durchsetzend ventralwärts bis in die Vordersäule zieht, umspinnt dort fächerförmig ausstrahlend die motorischen Vordersäulenzellen (Fig. 147b); diese letzteren, sehr kräftigen Kollateralen („Reflexkollateralen“) entspringen von dem gleich an die Teilungsstellen grenzenden Abschnitt der Stammfasern und bilden das Reflexbündel.
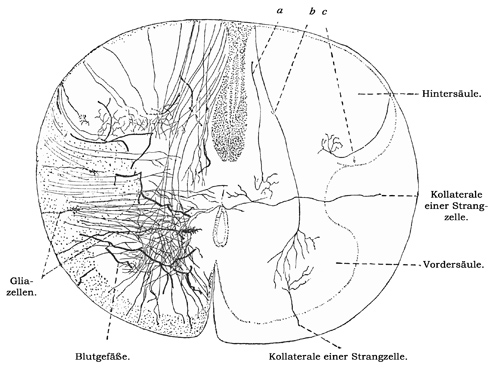
Fig. 147.
Querschnitt durch das Rückenmark einer neugeborenen Ratte, Kollateralen. 75mal vergr. Auf der rechten Hälfte ist nur je ein Repräsentant jeder Art eingezeichnet. Technik Nr. 99a, S. 271.
Reflexbündel und Dorsalkernkollateralen senken sich in lateralwärts konkavem Bogen in die graue Substanz und sind in ihrer ansehnlichen Masse leicht wahrzunehmen (Fig. 143). Man hat ihre Einsenkungsstelle „Einstrahlungszone“, „Wurzeleintrittszone“, genannt.
Ein weiterer, kleiner Teil der Hinterwurzelfasern endlich tritt durch die hintere graue Kommissur in die Hintersäule der anderen Seite. Ein letzter, ebenfalls kleiner Teil geht quer durch die Hintersäulenbasis zum Seitenstrang derselben Seite. Wie die Kollateralen verhalten sich auch die Enden der Stammfasern, die wahrscheinlich erst nach langem, unter Umständen bis in die Medulla oblongata hineinreichendem Verlaufe in die graue Substanz umbiegend endigen.
Die Eigentümlichkeiten der Subst. grisea centralis und Subst. gelatinosa, welche auch zur grauen Substanz gehören, werden durch die Menge der Neuroglia bedingt und sollen mit dieser beschrieben werden.
Was den feineren Bau der weißen Substanz betrifft, so besteht diese nur aus Nervenfasern, markhaltigen und marklosen. Die Dicke der Fasern ist sehr verschieden; die dicksten Fasern finden sich in den Vordersträngen und an den lateralen Teilen der Hinterstränge, die feinsten in den medialen Teilen der Hinterstränge und in den Seitensträngen da, wo die weiße Substanz an die graue stößt. In den übrigen Partien sind dicke und dünne Fasern gemischt vorhanden. Die meisten Nervenfasern verlaufen der Längsachse des Rückenmarkes parallel, sind also in dessen Querschnitte quer getroffen. Außerdem kommen schräg verlaufende Fasern vor. Solche liegen in größerer Anzahl vor der grauen Kommissur und bilden, sich kreuzend, die weiße Kommissur (Fig. 143).
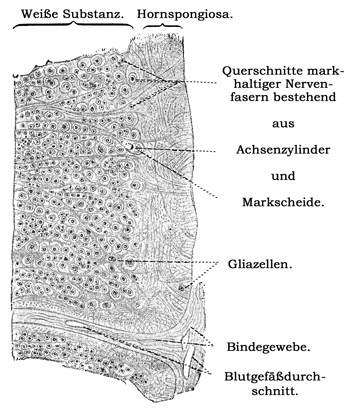
Fig. 148.
Stück eines Querschnittes des menschlichen Rückenmarkes (Seitenstranggegend). 180mal vergrößert. Technik Nr. 98b, S. 271.
Sehr wichtig ist die Querschnittstopographie der weißen Substanz, deren Kenntnis zum Verständnis vieler Krankheitsbilder notwendig ist, bezüglich dieser Topographie muß auf die Spezialschriften verwiesen werden.
Die Neuroglia, deren elementare Zusammensetzung oben (S. 140) beschrieben ist, schließt die nervöse Substanz allseitig von dem Blutgefäßbindegewebsapparat ab.
Bindegewebe findet sich im Rückenmarke nur sehr spärlich in der unmittelbaren Umgebung der Blutgefäße, die von der Pia mater aus von allen Seiten in die weiße Substanz eindringen, aber in der Regel vor der grauen Substanz haltmachen.
Gegen alle Bindegewebsoberflächen (also auch an den Gefäßgrenzen) sind feinere oder gröbere gliöse Membranae limitantes ausgebildet. Besonders kräftig ist eine solche an der ganzen Oberfläche des Rückenmarkes (sogenannte Hornspongiosa) zu finden, wo sie von einem dichten Filz von Gliafasern gestützt wird (Fig. 148).
Von hier aus erstrecken sich verschieden kräftige, gliöse Septen in die weiße Substanz hinein.
Die weiße Substanz wird von dem ziemlich gleichmäßig verteilten, gliösen Plasmodium durchzogen, das alle Nervenfasern umhüllt; die in der weißen Substanz liegenden Zellkerne gehören sämtlich dem Gliaplasmodium an.
Mit der Golgi-Methode (siehe S. 271), die nur Bruchstücke des Gliaplasmodiums inkrustiert, stellen sich die Elemente der Glia in der weißen Substanz meist als „Langstrahler“ (siehe Fig. 92, S. 141) dar.
In der grauen Substanz bildet die Glia teilweise einen noch dichteren Filz; man findet hier die sogenannten Kurzstrahler am häufigsten.
Besonders reich an gliöser Substanz ist die unmittelbare Umgebung des Zentralkanals, der bei jüngeren Individuen regelmäßig mit den Ependymzellen (s. S. 142) ausgekleidet ist.
In Golgi-Präparaten besitzen die Ependymzellen einen radiär die graue, bei Embryonen auch die weiße Substanz durchsetzenden Fortsatz; nach dem Lumen zu sind diese Zellen mit fädigen Anhängen versehen.
Beim Erwachsenen setzen sich die Ependymzellen nur hinten (in das Septum medianum posterius) und vorne, bis zum Grunde der Fissura mediana anterior noch bis zur Oberfläche des Rückenmarkes fort.
Sehr oft ist der Zentralkanal beim Erwachsenen durch gewucherte Ependymzellen ganz oder teilweise geschlossen.
Gehirn.
Die Zusammensetzung des Gehirnes findet ihren charakteristischen Ausdruck sowohl in der Anordnung der weißen Substanzen wie in den auch hier durch die mehr graue Farbe auffallenden Ganglienzellgruppen. Bieten die aus markhaltigen Nervenfasern zusammengesetzten weißen Substanzen histologisch keine Besonderheiten, so ist dies im höchsten Grade bei den grauen Substanzen der Fall, die nach Form, Zusammenlagerung, Größe und Pigmentgehalt der Ganglienzellen viele bedeutsame Differenzen aufweisen. Der Verteilung der grauen Substanzen folgt deshalb naturgemäß die Darstellung.
Die hochkomplizierte Zusammensetzung des Gehirnes entstammt einer embryonalen Anlage, die sich histologisch zunächst dem Rückenmarke durchaus ähnlich verhält. So behalten denn auch Teile des Gehirnes zeitlebens in ihrem Aufbau eine innige Verwandtschaft zum Rückenmarke bei. Insbesondere sind dies Teile, die dem Ventrikelsystem der kaudaleren Hirnabschnitte anliegen. Die charakteristischen Abweichungen hängen mit den besonderen Aufgaben zusammen, die die Ausbildung der Sinnesorgane und der großen regulativen Apparate (Großhirnrinde, Kleinhirnrinde u. a.) mit sich bringen. Diese dem Hirnstamm eingelagerten Teile umfassen das zentrale Höhlengrau, die Ursprungs- und Endkerne der Hirnnerven und gewisse als dem vegetativen System zugehörig erkannte Ganglienzellgruppen (besonders im Zwischenhirne).
Ontogenetisch sehr frühzeitig kommt es zur Absonderung großer Ganglienzellgruppen, die neue besondere Formationen bilden; unter ihnen sind am auffälligsten die sogenannten Stammganglien des Großhirnes, die Substantia nigra, der Nucleus ruber, der Nucleus olivaris inf. und der N. dentatus des Kleinhirnes. Diese Ganglienzellgruppen bleiben dem Ventrikelsystem noch relativ genähert, während sich endlich durch frühzeitige Zellabwanderung die grauen Rindensubstanzen in Groß- und Kleinhirn ausbilden. Diese stellen die größte Abweichung vom einfacheren Aufbau der Nervensubstanz dar, zeigen gleichzeitig in Aufbau und Funktion das höchste erreichte Differenzierungsstadium.
Der Ausgangsort für die Ausbildung aller Strukturen im Gehirn bildet wiederum die dem Ventrikelsystem anliegende Matrix, deren Überrest als Ependym alle Hohlräume des Gehirnes auskleidet. Ihm kommen die gleichen Charaktere wie im Rückenmarke zu; auf die besondere Ausgestaltung dieses einschichtigen Epithels im Bereiche der Plexus chorioidei wird unten (S. 252) besonders eingegangen.
a) Die dem Rückenmarksgrau ähnlich gebauten Teile des Hirnstamms.
Hierher gehören die Ganglienzellgruppen, die von mannigfachen kurzen und langen Bahnen durchsetzt, in den Gebieten des Hirnstammes von der Rautengrube bis zum Infundibulum mit dem Ursprunge der motorischen, dem Eintritt der sensiblen Hirnnerven in Verbindung stehen. Ferner kennen wir auch im Hirnstamm große Nervenzellenhaufen, die etwa mit den Bahnzellen des Rückenmarkes in Vergleich zu setzen sind ([sensible] Hinterstrangkerne, [motorische] Nucleus ruber u. a.); diese sind Nervenzellsysteme, die in die Kette der langen motorischen und sensiblen Bahnen eingeschaltet sind. Auch Strangzellen fehlen dem Hirnstamm natürlich nicht.
Histologisch finden wir deshalb prinzipiell die gleichen Zellformen wie im Rückenmark, multipolare (in den Ursprungskernen des motorischen Trigeminusanteiles und im Hypoglossuskern auffallend große) motorische Zellen, ferner Zellen vom Typus der Bahnzellen, Strangzellen usw. (eine ins Einzelne gehende Schilderung kann hiervon nicht gegeben werden).
In neuerer Zeit wendet sich die Aufmerksamkeit besonders den Zentren für das vegetative Nervensystem zu, die vermutlich durch die ganze Länge des Hirnstammes verteilt, ihren kranialen Abschluß im Zwischenhirn finden. Hier gehören die in dichte Fasergeflechte eingeschlossenen Gruppen kleinerer Ganglienzellen, wie sie im zentralen Höhlengrau des III. Ventrikels (mediale Fläche des Thalamus, Tuber cinereum, Corpus mamillare, Ganglion interpedunculare usw.) gefunden werden, zu den vegetativen Zentren. Hierfür spricht auch die Ähnlichkeit der hier gefundenen Ganglienzellen mit denjenigen des viszeralen Vaguskernes und der sympathischen Anteile in den Seitenhörnern des Rückenmarkes.
Aus der großen Zahl der besonderen Einrichtungen des Hirnstammes greifen wir hier noch die Olive inferior nebst dem N. dentatus, die Substantia nigra und die sogenannten Stammganglien heraus.
b) Oliva inferior und N. dentatus.
In allen wesentlichen Einzelheiten des Aufbaues übereinstimmend, haben wir anscheinend Apparate vor uns, die in irgendeiner Beziehung zur Regulation des Gleichgewichtes stehen; diese Gebilde sind beim aufrecht gehenden Menschen bedeutend stärker entwickelt als bei den vierbeinigen Säugern.
Die ziemlich einheitlich gebauten Ganglienzellen dieser gefalteten grauen Bänder sind von mittlerer (18-25 µ) Größe, besitzen zahlreiche, kleine Nißlkörper, zumeist reichlich gelbes Pigment und viele sehr stark verästelte Dendriten; der Neurit geht mannigfache Verbindungen ein, von denen z. B. die Verbindung der unteren Olive mit dem Kleinhirn, des N. dentatus mit dem N. ruber (von da Bahnen zu den motorischen Kernen des Rückenmarkes) sicher gestellt sind.
c) Substantia nigra.
Hier wird die schon makroskopisch sichtbare Dunkelfärbung dadurch hervorgerufen, daß die meist spindelförmigen Ganglienzellen ein tiefdunkelbraunes, feinkörnig angeordnetes Pigment enthalten (Melanin).
Das Pigment, das den meisten Tieren an dieser Stelle fehlt, entwickelt sich beim Menschen vom 4. bis zum 18. Lebensjahre, ohne dann weiterhin zuzunehmen. Auch ist es längst nicht in allen Ganglienzellen dieser Regionen vorhanden. Die Bedeutung dieser Pigmentierung, die auch in den Nervenzellen des Locus coeruleus zu finden ist, bedarf noch der Aufklärung.
d) Die Stammganglien.
Diese in ihrer Bedeutung noch stark umstrittenen, gewaltigen Nervensubstanzanhäufungen, die man in N. caudatus und N. lentiformis unterteilt, enthalten zahlreiche meist kleinere multipolare Ganglienzellen, deren Form und Verteilung es besser erscheinen lassen, den N. caudatus und das Putamen des Linsenkernes zusammenzufassen und vom Globus pallidus abzutrennen; auch neuere experimentell physiologische, wie pathologische Erfahrungen deuten in diese Richtung.
Die dunklere, mehr rotbraune Färbung des N. caudatus und des Putamens rühren von dem größeren Zellreichtum dieser Abschnitte her, während der Globus pallidus seine mehr gelbgraue Farbe einmal einem größeren Reichtum an Nervenfasern, dann auch dem Vorhandensein eines gelblichen Pigmentes verdankt.
Nach neueren Forschungen ist das Corpus striatum ein wichtiges, übergeordnetes Zentrum für zahlreiche Automatismen und steht durch viele Bahnen mit kaudaleren Zentren in Verbindung; unter den letzteren spielt die Regio hypothalamica, über deren äußerst komplizierte Zusammensetzung hier nichts gesagt werden soll, eine wichtige Mittlerrolle.
e) Die Großhirnrinde.
Wie in allen Teilen der grauen Substanz; so sind auch hier Nervenzellen, Nervenfasern und Glia die Elemente, die das histologische Bild bestimmen. Die typische Art ihrer Zusammenlagerung ist in der Großhirnrinde, wenn man die Zellen betrachtet, eine bestimmte parallel zur Oberfläche angeordnete Schichtung.
Diese kommt besonders gut an Zellenpräparaten (Färbung nach Nißl) zum Ausdruck. Faserpräparate (Weigertsche Markscheidenfärbung) müssen zur Ergänzung herangezogen werden.
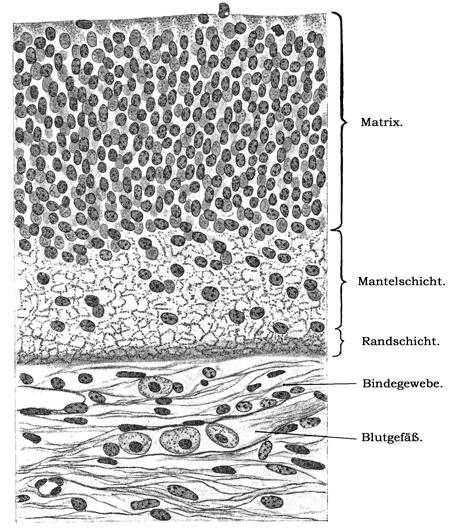
Fig. 149.
Querschnitt durch die Wand des Großhirns bei einem ca. 10 wöchentlichen menschl. Embryo. 500mal vergrößert.
Trotz der scheinbaren Gleichförmigkeit in der Zusammensetzung der Großhirnrinde bestehen im Einzelnen nicht unerhebliche Verschiedenheiten, die in typischer Form für die einzelnen Areae bestimmte Schichtungsformen erkennen lassen. Für jedes nachweislich einer besonderen Funktion vorstehende Rindengebiet gibt es einen besonderen Schichtungstypus (Zytoarchitektonik)[100].
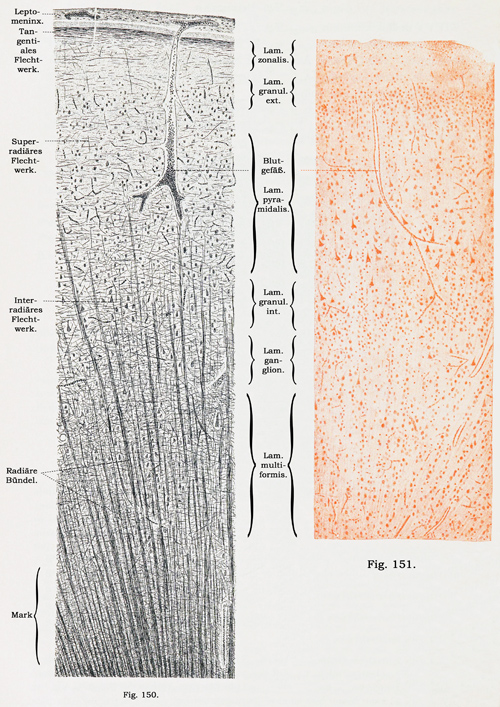
Fig. 150 und 151.
Stücke senkrechter Schnitte der Großhirnrinde (hintere Zentralwindung) des erwachsenen Menschen. 45mal vergr. Fig. 150 Markscheidenfärbung nach Technik Nr. 97a, S. 270. Fig. 151 Zellenfärbung nach Technik Nr. 98b, S. 127.
In früher Embryonalperiode besteht die Wand des Großhirns, ähnlich wie diejenige des Rückenmarkes und der übrigen Teile des Zentralnervensystems aus drei Schichten (Fig. 149): 1. aus der zellreichen Matrix, die dem Ventrikel unmittelbar anliegt, 2. der weniger zellreichen Mantelschicht und 3. der zellfreien Randschicht.
Mit dem weiteren Dickenwachstum der Großhirnwand wandern immer mehr Neuroblasten (siehe S. 134) in die Mantelzone ein, ohne daß es zunächst zu der typischen Schichtung kommt; diese bildet sich erst im 6.-7. Embryonalmonat aus.
Der Ausgangszustand, der auch in einer großen Reihe von Rindenarealen beibehalten wird, besitzt, wenn wir ausschließlich die Verteilung der Zellen berücksichtigten sechs Schichten. Diese sind:
I. Lamina zonalis,
II. Lamina granularis externa,
III. Lamina pyramidalis,
IV. Lamina granularis interna,
V. Lamina ganglionaris,
VI. Lamina multiformis.
Von diesem Grundtypus (Fig. 150 u. 151) lassen sich die Abweichungen in der Schichtung bei verschiedenen Rindenarealen verstehen, indem es da entweder zu einer Schichtenvermehrung (durch Unterteilung einer oder der anderen Schichte), oder zu einer Schichtenverminderung kommt.
Die Abgrenzung eines Areals mit bestimmtem Schichtungstypus gegen ein anderes ist in der Regel ziemlich scharf ausgeprägt.
Zu dem typischen Aufbau eines Rindenbildes trägt auch die Verteilungsart der Nervenfasern bei. Überall strahlen aus dem Rindenweiß Faserbündel (sogenannte Radii) in das Rindengrau ein. Innerhalb des Graus werden verschiedene Lagen angetroffen, in denen sich Gruppen von Nervenfasern parallel zur Oberfläche ausbreiten (tangentiales Flechtwerk in der Lamina zonalis, superradiäres Flechtwerk in den oberen Lagen der III. Schichte, interradiäres Flechtwerk etwa in der IV. Schichte).
Auch in dieser Beziehung sind die einzelnen Rindenareale recht verschieden ausgebildet.
In der einzelnen Schichten der Großhirnrinde sind folgende Strukturen bemerkenswert.
I. Lamina zonalis (Molekularschicht, Neurogliaschicht). In dieser Grenzschichte gegen das piale Bindegewebe, ist das Gliaplasmodium, das in den oberflächlichsten Lagen einen dichten Grenzfilz (siehe Fig. 91, S. 141) bildet, vorherrschend; in ihm verästeln sich die Dendriten der in den tieferen Schichten liegenden Nervenzellen; außerdem ist hier mehr oder weniger deutlich die Tangentialfaserschichte (Fig. 150) ausgebildet.
Bei Säugetieren finden sich hier noch in geringer Zahl die Caljalschen Zellen, die mit ihren feinen Ausläufern parallel der Hirnoberfläche liegen; ihre nervöse Natur ist unsicher. Beim Menschen finden sich an deren Stelle die Retziusschen Zellen, deren unregelmäßig gestalteter Körper parallel der Oberfläche lange Fortsätze aussendet, von denen kurze Seitenzweige senkrecht in die Höhe steigen; andere Fortsätze gehen in die Tiefe (Fig. 152). Sie gehören wahrscheinlich zu den Gliazellen.
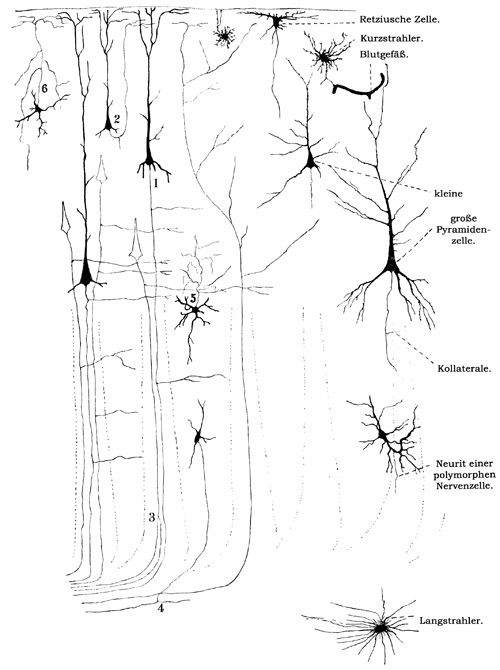
Fig. 152.
Schema der Großhirnrinde. Die Zellen rechts sind nach einem Präparate vom erwachsenen Menschen gezeichnet. 120mal vergr. Technik Nr. 99b, S. 272. Die radiären Bündel sind durch punktierte Linien angedeutet. Die Dicke der Hirnrinde ist im Schema auf die Hälfte reduziert, also nur 60mal vergrößert.
II. Lamina granularis externa (Schichte der kleinen Pyramidenzellen) Figg. 151, 153, 154); in ihr liegen sehr kleine (10-12 µ) Ganglienzellen von pyramidenförmiger Gestalt; die Spitze der Pyramidenzelle läuft in einen langen Zytoplasmafortsatz (Dendriten) aus, der nach Abgabe kleiner Seitenzweige in die Lamina zonalis tritt, wo er in viele, oft mit kleinen Zacken besetzte, Äste zerfällt (Fig. 152, 1, 2). Deswegen ist auch die Größe der Pyramidenzellen schwer zu bestimmen; die bedeutenden Differenzen in den Größenangaben sind auf diesen allmählichen Übergang des Zellkörpers in den Fortsatz zurückzuführen. Von den Seitenflächen und von der Grundfläche der Pyramidenzelle entspringen nur kleine Dendriten. Der Neurit entspringt stets von der Grundfläche und zieht nach Abgabe verzweigter Seitenäste (Kollateralen) in der Regel der weißen Substanz (dem Marke) zu, um dort in eine oder sich teilend in zwei Nervenfasern (Fig. 152, 3) überzugehen; zuweilen aber verläuft er in die Lamina zonalis umbiegend, wo er sich teilend in das Geflecht der Tangentialfasern tritt (Fig. 152, 2). Der Neurit und seine Kollateralen sind von einer markhaltigen Scheide umhüllt.
III. Lamina pyramidalis (Schicht der mittleren und großen Pyramidenzellen); die Größe der Pyramidenzellen, deren sehr starker Neurit stets dem Marke zuläuft, nimmt nach der Tiefe hin zu (20-40 µ). Diese Schichte ist in der Regel die bedeutendste an Ausdehnung.
IV. Lamina granularis interna. Sie ist beim erwachsenen Menschen sehr verschieden in den einzelnen Regionen ausgebildet; meist ist sie besonders zellreich; die einzelnen Zellen sind sehr klein und von sehr wechselnder Form.
Durch die in dieser Schichte schon stark ausgebildeten Radii (siehe S. 241) werden die Zellen dieser Schicht oft säulenartig angeordnet.
V. Lamina ganglionaris. In vielen Regionen der Rinde auffallend zellarm, enthält sie in der Regel wieder größere dem Pyramidentypus entsprechende Zellformen, in der Rinde der (motorischen) vorderen Zentralwindung die sogenannten Beetzschen Riesenpyramidenzellen (siehe Fig. 153).
Diese pyramidenförmigen Zellen sind die Ursprungszellen für die motorischen Pyramidenbahnen; sie gleichen den motorischen Zellen des Hirnstammes und des Rückenmarkes, die zum peripheren motorischen Neuron gehören, in der Anordnung des Nißl-Körper, die auch hier den Zelleib „getigert“ erscheinen lassen. In den übrigen Pyramidenzellen sind die mehr feinscholligen Nißl-Körper weniger charakteristisch angeordnet.
VI. Lamina multiformis. Mit vorwiegend spindelförmigen, in der Form aber sehr wechselnden Ganglienzellen ausgestattet, bildet dieses Gebiet die meist nicht sehr scharfe Grenze gegen das Mark.
Die große Mehrzahl der Ganglienzellen der Hirnrinde steht durch ihren Neurit mit subkortikalen Zentren in Verbindung; doch gibt es außer den oben erwähnten Zellen in der II. Schicht auch sonst viele Zellen vom Golgischen Typus, deren verästelter Neurit bald auf die nähere Umgebung der Zelle beschränkt, bald bis zur Lamina zonalis ausgedehnt ist, wo er reich verästelt endet (Fig. 152, 5 u. 6).
Über die regionalen Verschiedenheiten kann in diesem Buche kein vollständiges Bild entworfen werden. Nur als Beispiele mögen an Hand von Fig. 153 und Fig. 154 zwei typische Rindenregionen besprochen werden, in denen der Aufbau von dem sechsschichtigen Grundtypus abweicht.
Fig. 153 entstammt der vorderen Zentralwindung, die wir als Ausgangspunkt der zentralen motorischen (Pyramiden-) Bahn kennen: Schicht I-III sind deutlich ausgebildet; durch das Fehlen der IV. Schicht geht Schicht III unmittelbar in Schicht V über, deren Riesenpyramiden so an die großen Pyramidenzellen der III. Schicht unmittelbar anzuschließen scheinen.
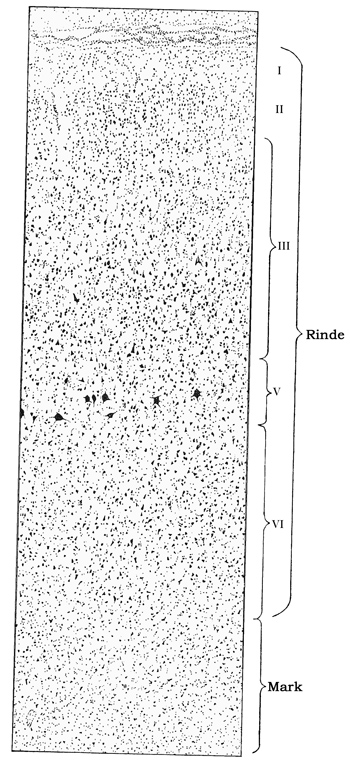
Fig. 153.
Schnitt durch die vordere Zentralwindung; Mikrophotographie, in der die Nervenzellen hervorgehoben wurden. (Präp. von Dr. Spatz-München.) 30mal vergrößert. Technik Nr. 52, S. 148.
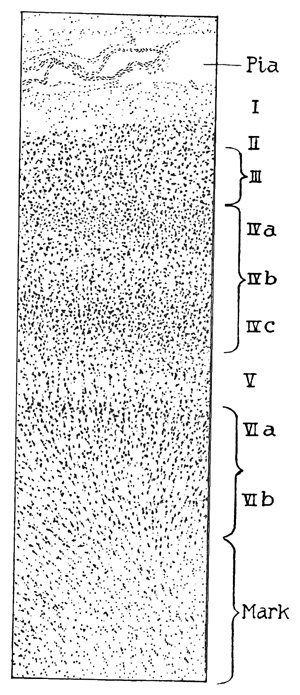
Fig. 154.
Schnitt durch die Großhirnrinde im Gebiet der Fiss. calcarina; Technik und Vergrößerung wie bei Fig. 153. (Präp. von Dr. Spatz-München.)
Fig. 154 ist ein Durchschnitt durch das Gebiet der Fissura calcarina, die das kortikale Sehzentrum in sich birgt; hier liegt eine Schichtenvermehrung vor, indem die Zona granularis interna (IV) in drei Schichten geteilt erscheint. Im ganzen erscheint diese Rindenregion schmal im Vergleich zu der Rinde der Zentralwindung.
Wenn wir auch noch weit davon entfernt zu sein scheinen, die funktionelle Bedeutung der Differenzen im Aufbau der einzelnen Rindenregionen zu erkennen, so hat doch die mühsame Erforschung dieser Hirntopographie die Lokalisation einzelner Funktionen in der Großhirnrinde außerordentlich gefördert.
Die Neuroglia verhält sich derjenigen des Rückenmarkes durchaus ähnlich; die Inkrustierung mit Silberchromat (Golgi) läßt auch hier im wesentlichen zwei Bilder hervortreten: Langstrahler, vorzugsweise im Mark, und Kurzstrahler, die meist in der Rinde gefunden werden (Fig. 152).
Auch hier sind diese Formen natürlich nur als Bruchstücke des Gliaplasmodiums aufzufassen. Dieses bildet im Übrigen an Blutgefäß- und Bindegewebsgrenzflächen wiederum Grenzsäume.
f) Die Kleinhirnrinde.
Da die Furchenbildung des Kleinhirns diejenige des Großhirns weit übertrifft, ist die Zahl der in der Kleinhirnrinde untergebrachten Ganglienzellen trotz der kleineren Gesamtgröße dieses Hirnteiles sehr groß. Schon mit bloßem Auge erkennt man an Durchschnitten durch das Kleinhirn das relative geringe Ausmaß der weißen Substanz (Mark) gegenüber der Rinde. An der letzteren selbst tritt die äußerste, zellarme „Molekularschicht“ deutlich hervor gegen die zellreiche „Körnerschicht“. Erst mit dem Mikroskop erkennt man an der Grenze beider eine Lage von großen Zellkörpern, die in gewissen Abständen voneinander stehend, als „Schichte der Purkinjezellen“ die Dreizahl der Rindenschichten vervollständigen (Fig. 155).
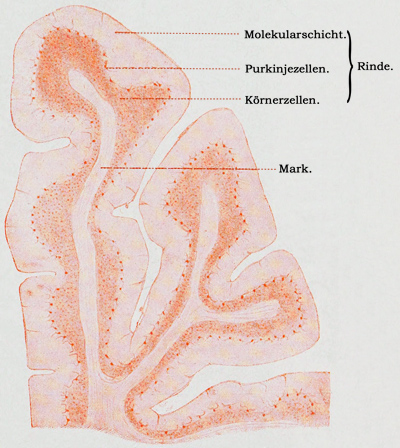
Fig. 155.
Stück eines senkrechten Schnittes durch das Kleinhirn des erwachsenen Menschen. 12mal vergr. Technik Nr. 98b, S. 271.
Im Kleinhirn endigen (genaueres darüber siehe die Darstellungen, die sich mit der Bahnentopographie beschäftigen) eine große Reihe von Neuriten, die aus Rückenmarks-, Brücken-Mittelhirnganglienzellen, zu einem bedeutenden Teile auch aus den Oliven stammen. Die genauere Endigungsweise dieser Fasern ist nicht bekannt. Zu einem großen Teile dürfte ihre Endaufsplitterung aber in der Körnerschichte zu suchen sein.
Der weitaus größte Teil der Ganglienzellen, die wir in der Kleinhirnrinde finden, erstreckt sich mit ihrem Neurit nicht über das Gebiet der Kleinhirnrinde hinaus, muß also mit uns unbekannten Assoziationsverrichtungen in diesem Gebiete selbst vertraut sein.
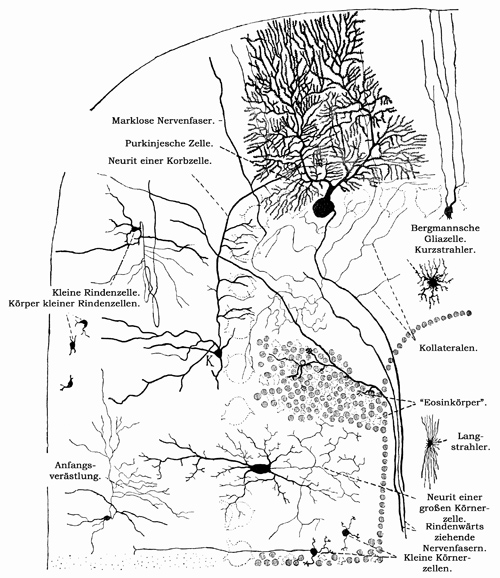
Fig. 156.
Schema der Kleinhirnrinde. Alle Elemente sind nach Präparaten vom erwachsenen Menschen (120mal vergr.) gezeichnet. Technik Nr. 99c, S. 272. K Korbzelle.
Nur die Purkinjezellen entsenden einen langen Neuriten, der in das Mark übertritt. Sein Ziel ist uns unbekannt.
Solange die Kleinhirnrinde noch nicht völlig entwickelt ist, besteht eine Reihe von Eigentümlichkeiten, die dem Erwachsenen fehlen. So findet sich bei Embryonen und jungen Tieren über der noch wenig ausgebildeten Molekularschicht eine „oberflächliche Körnerschichte“; diese bleibt bei vielen Tieren zeitlebens erhalten, beim Menschen kann sie bei Entwicklungsstörungen, z. B. bei Idiotie auch im späteren Leben gefunden werden. Die Zellen dieser embryonalen Schichte wandern zum Teil in die tieferen Schichten aus, zum Teil bilden sie sich zu Gliazellen um.
Wir besprechen zuerst die Purkinjezellen und die mit ihnen unmittelbar in Verbindung stehenden Bildungen.
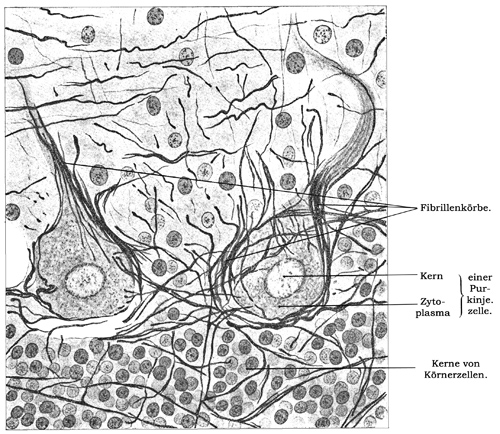
Fig. 157.
Fibrillenkörbe um die Purkinjezellen. 750mal vergrößert. (Präp. von Privdoz. Ph. Stöhr jun. Würzburg.) Technik s. O. Schultze, Sitzber. Physik.-Med. Ges. Würzburg, 1918.
Ihr etwa birnenförmiger, pigmentarmer Körper, der von gut entwickelten Nißl-Schollen eingenommen wird, schickt zwei starke Dendriten in die Molekularschichte, welche sich dortselbst in ein ungemein reiches Astwerk verzweigen und bis zur freien Rindenoberfläche reichen (Fig. 89, S. 139 und Fig. 156). Das gesamte, reichverzweigte Dendritensystem nimmt ebenso, wie wir es an Spalierbäumen kennen, nur eine relativ schmale Schicht ein; die Ausbreitungsebene steht immer quer zur Längsrichtung der Windungen, so daß die Verästelung nur auf Querschnitten der Windungen zu sehen ist.
Die Ursprungsstelle des Neuriten ist der Körnerschichte zugekehrt; die zuerst marklose Gliahülle wird noch innerhalb der Körnerschicht markhaltig (siehe S. 145); Kollateralen, die hier abgegeben werden, verästeln sich entweder noch in der Körnerschicht, oder sie laufen in die Umgebung der Purkinjezellkörper zurück, um dort zu enden.
Endlich gelangt der Neurit in die Markschichte.
Die Zellkörper der Purkinjezellen werden von Fibrillenkörben umschlossen (Fig. 157), deren Fibrillen sich größtenteils aus den Verzweigungen der in der Molekularschichte gelegenen (2.) Korbzellen herleiten lassen (Fig. 156).
Die Korbzellen sind multipolare Ganglienzellen, deren Dendriten hauptsächlich gegen die Oberfläche streben. Ihr langer, anfangs dünner, weiterhin dicker Neurit verläuft horizontal in der Querrichtung der Windungen und schickt gegen die Oberfläche einzelne Kollateralen; wichtig sind aber vor allem die Äste des Neuriten, die er senkrecht in die Tiefe an die Fibrillenkörbe der Purkinjezellen entsendet. An der Bildung der Fibrillenkörbe haben aber wohl zweifellos auch andere Zellen Anteil, zum Teil auch solche, die in der Körnerschichte liegen; die von hier kommenden Fibrillenzüge nennt man auch „Kletterfasern“; sie reichen außerdem bis zu den Dendritenverzweigungen der Purkinjezellen. Zweifellos bilden die Fibrillenkörbe ein hochkompliziertes und wichtiges, wenn auch noch nicht deutbares Strukturelement der Kleinhirnrinde.
In der Molekularschicht, die zu einem großen Teil von den Dendritenverzweigungen der beiden eben beschriebenen Zellarten eingenommen wird, kommen außerdem noch (3.) sogenannte kleine Rindenzellen vor.
Sie unterscheiden sich von den Korbzellen hauptsächlich dadurch, daß sie mit den Fibrillenkörben nicht in Beziehung treten (Fig. 156).
Wenig geklärt ist noch die Zusammensetzung der Körnerschicht, in der wir neben zahlreichen Zellen ein dichtes Flechtwerk von Fibrillen finden, die zur Endaufsplitterung der rindenwärts ziehenden Fasern gehören (Fig. 159).
Fig. 158.
Ans einem feinen Schnitte durch die Kleinhirnrinde des erwachsenen Menschen. 400mal vergr. Technik Nr. 100a, S. 272.
Dieses Fasergeflecht wird auch von den Neuriten der Purkinjezellen durchzogen. Außer diesen und den oben erwähnten Fasern liegen zwischen den Zellen der Körnerschicht eigentümliche körnig strukturierte Substanzhaufen, die sich wie Plastosomen färben, daher von manchen Autoren als Neurosomenhaufen bezeichnet werden; auch bei der üblichen Hämatoxylin-Eosinfärbung nehmen sie reichlich Farbstoff (und zwar Eosin) auf, weswegen man sie auch „Eosinkörper“ genannt hat. Andere Autoren endlich sehen in diesen Strukturen Degenerationsprodukte von Fibrillen. Mit der Endaufsplitterung der Nervenfasern stehen sie offenbar in inniger Beziehung.
Unter den Zellen der Körnerschicht unterscheidet man 4. die kleinen und 5. die großen Körnerzellen, die im Golgibild durch ihre charakteristischen Formen sehr leicht zu unterscheiden sind. Die Neuriten beider Zellformen verlassen die Kleinhirnrinde nicht.
Dabei sind die kleinen Körnerzellen multipolare Ganglienzellen mit kurzen, krallenförmig endigenden Dendriten und einem feinen, von keiner Markscheide umhüllten Neuriten, der senkrecht in die Molekularschichte zieht und dort T-förmig in zwei Äste sich teilt; diese Äste verlaufen längs der Windungen, parallel der Oberfläche derselben und enden frei und unverästelt.
Die großen Körnerzellen, welche an Zahl gegen die kleinen sehr zurücktreten, sind ebenfalls multipolar, aber doppelt so groß als die zuerst beschriebenen; ihre reicher verästelten Dendriten (Fig. 156) reichen bis in die Molekularschicht hinein, während der markwärts gerichtete Neurit sich noch innerhalb der Körnerschicht in ein sehr reiches Astwerk auflöst.
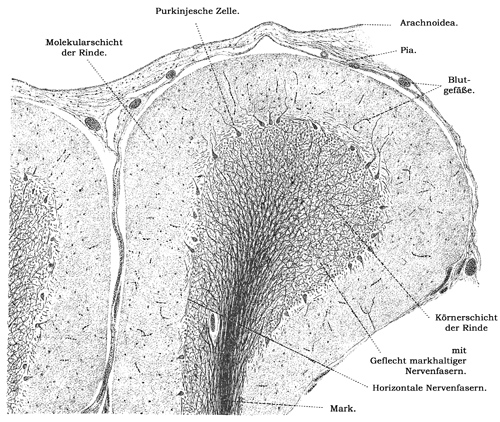
Fig. 159.
Stück eines Schnittes durch das Kleinhirn des erwachsenen Menschen. 45mal vergr. Technik Nr. 97a, S. 270.
Die Glia, die sich im Kleinhirn in ihrem Grundaufbau ebenso wie im ganzen Zentralnervensystem verhält — auch hier ergeben Golgipräparate in der Rinde Kurzstrahler, im Mark Langstrahler —, weist nur in der Molekularschicht der Rinde auffallende, bemerkenswerte Bildungen auf. Die Molekularschichte ist von zahlreichen, senkrecht zur Oberfläche aufsteigenden, Gliafasermassen durchzogen, die zu „Zellen“ gehören, die etwa in der Höhe der Purkinjezellen liegen (Bergmannsche Gliazellen). Auch sie treten in Golgipräparaten (Fig. 156) oft sehr schön hervor.
Nicht selten (besonders im Alter) finden sich in der Hirnsubstanz runde oder biskuitförmige Körper mit deutlicher Schichtung, welche sich mit Jodtinktur und Schwefelsäure violett färben, also dem Amylum verwandt sind. Diese Corpuscula amylacea (siehe Techn. Nr. 101, S. 272) sind fast regelmäßig in den Wänden der Hirnhöhlen, aber auch noch an vielen anderen Orten, sowohl in der grauen, wie in der weißen Substanz, auch im N. opticus, vorhanden, zeigen bei genauerer Untersuchung eine homogene, mit einzelnen Fortsätzen versehene Kapsel und sind durch Amyloidinfiltration umgebildete Gliazellen.
Gefäße und Hüllen des Zentralnervensystems.
Die bindegewebige Umgebung der nervösen Zentralorgane ist zu einer wichtigen Hilfseinrichtung für dieselben geworden. Gehirn und Rückenmark eng anliegend führt die Pia mater[101] (Leptomeninx)[102] den nervösen Zentralorganen die Blutgefäße zu, die überall von spärlichem Bindegewebe begleitet, in die Nervensubstanz eindringen. Die Arachnoidea[103], aus einem schwammartigen Gerüst feinerer und gröberer Balken eines eigenartigen Bindegewebes bestehend, ist von einer in langsamer Zirkulation befindlichen Flüssigkeit, dem Liquor cerebrospinalis, durchsetzt; dieser hat vermutlich eine zweifache Bedeutung: einmal dient er dem Stoffaustausch, dann bildet er, da er nach außen an eine überall dicht abgeschlossene bindegewebige und knöcherne Kapsel angrenzt, eine Art von Wasserkissen, in dem die nervösen Zentralorgane bei Körperbewegungen elastisch verschieblich sind, ohne Schaden zu leiden. Gegen die knöcherne Wandung der Kapsel schließt endlich die Dura mater (Pachymeninx)[104] ab, die in der Schädelkapsel gleichzeitig das innere Periost bildet und also gegen den Knochen unverschieblich ist, im Wirbelkanal dagegen unabhängig vom Periost eine durch den epiduralen Spaltraum vom Periost getrennte elastische Hülle darstellt; dieses Verhalten ist an dieser Stelle notwendig, weil sich die Länge des Wirbelkanals bei den Rumpfbewegungen andauernd etwas verändert.
Die Hüllen des Zentralnervensystems entstehen aus der embryonalen bindegewebigen, zunächst einheitlichen Umhüllung dadurch, daß die einzelnen Lagen durch Flüssigkeitsansammlungen voneinander getrennt werden.
Die schützende Funktion der Meningen, die durch die Knochenbildung extrem verstärkt wird, ist im Aufbau der Dura mater am stärksten ausgeprägt. Im Rückenmarkgebiet (Dura mater spinalis) besteht sie aus straffaserigem Bindegewebe, das viele elastische Fasern enthält. Ihre innere Oberfläche ist mit einer einfachen Lage platter Epithelzellen überzogen. Sie ist arm an Blutgefäßen und Nerven.
Die harte Hirnhaut (Dura mater cerebralis) ist zugleich Periost der inneren Schädelfläche und besteht aus zwei Schichten: 1. aus einer inneren, welche der Dura mater spinalis entspricht und — abgesehen von einem größeren Reichtum an elastischen Fasern — ebenso gebaut ist wie diese und 2. aus einer äußeren Schicht, welche dem Periost des Wirbelkanals entspricht. Sie besteht aus den gleichen Elementen wie die innere Schicht, nur verlaufen die äußeren Fasern in einer anderen Richtung (von vorn und lateral nach hinten und medianwärts) wie die inneren Fasern, welche von vorn median nach hinten und lateralwärts ziehen.
Die Blutgefäße bilden zwei Netze, die untereinander Verbindungen besitzen: 1. das äußere Netz ist als periostales Gefäßnetz zu betrachten und versorgt auch die Schädelknochen; 2. das innere, dicht am Plattenepithel des Subduralraumes liegende Kapillarennetz ist deshalb bemerkenswert, weil es der Ausbreitung von Erkrankungen günstig ist.
Die Nerven, die in der Dura mater reichlich angetroffen werden, gehören teilweise zu den Gefäßen, teilweise endigen sie frei im Bindegewebe.
Der die Dura mater von der Arachnoidea trennende Subduralraum steht mit Lymphräumen in Verbindung, die außerhalb des Zentralnervensystems liegen.
Durch Injektionen von gefärbten Flüssigkeiten bei Tieren, durch die Tatsache, daß Erkrankungen sich auf diesen Wegen ausbreiten, ist nachgewiesen, daß solche Zusammenhänge längs den Austrittsstellen der peripheren Nerven mit den Lymphbahnen dieser Nerven bestehen: dies ist dadurch möglich, daß sich die Dura an den Nerven eine Strecke weit fortsetzt (bei den Rückenmarksnerven bis zur Verbindung mit den Spinalganglien), auch sollen die Lymphbahnen der Nasenschleimhaut, die tiefen Lymphgefäße und Lymphknoten des Halses mit dem Subduralraum, der stets nur minimale Flüssigkeitsmengen enthält, in Verbindung stehen.
Arachnoidea
und
Pia mater
lassen sich histologisch nicht so gut voneinander trennen; beide sind durch zahlreiche Bindegewebsbälkchen, die den Subarachnoidealraum durchsetzen, miteinander verbunden.
Alle Maschenräume des Subarachnoidealraumes sind von Plattenepithel ausgekleidet; feine Bindegewebsbündel, die vielfach von sehr feinen elastischen Fasern umsponnen werden, bilden das hauptsächliche Substrat, in dem die Blutgefäße, die zu den nervösen Zentralorganen verlaufen, eingehüllt sind.
Die pialen Blutgefäße, die gut mit Nerven versorgt sind, dringen allenthalben von der Oberfläche aus in das Nervensystem ein und bilden ein in der grauen Substanz engmaschiges, in der weißen Substanz weites Netz von Kapillaren, welche überall miteinander zusammenhängen. Die in der Hirnrinde befindlichen Kapillaren münden in Venen, die nicht in der Rinde selbst, sondern darunter, in der weißen Substanz ihren Anfang nehmen und von da die Rinde passierend zu den in der weichen Hirnhaut liegenden Venen verlaufen. Das in den Kapillaren befindliche Blut muß also die ganze Rinde passieren, ehe es sich in Venen ergießt. Sämtliche Blutgefäße besitzen noch eine zweite, sogenannte adventitielle Scheide, welche oft nur aus einer einfachen Schicht platter Epithelzellen hergestellt wird und bei vielen Erkrankungen besonders charakteristische Veränderungen darbietet. Die lockere adventitielle Scheide der Blutgefäße läßt sich vom Subarachnoidealraum aus injizieren; es können sich also wohl auch natürlicherweise auf diesem Wege Stoffe ausbreiten. Die Wand der venösen Sinus durae matris wird nur durch eine aus platten Epithelzellen gebildete Haut hergestellt. Sie sind in das straffe Bindegewebe der Dura eingeschlossen und werden so dauernd offen gehalten.
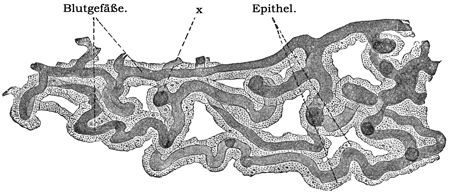
Fig. 160.
Stück des Plexus chorioideus des erwachsenen Menschen. 80mal vergr. × Blutgefäß im optischen Querschnitt. Die großen Punkte im Epithel (rechts unten) sind nicht Kerne, sondern Pigment und Fettkörnchen. Technik Nr. 102b, S. 272.
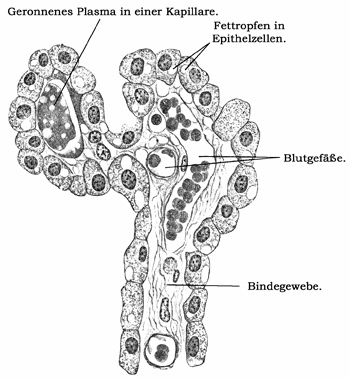
Fig. 161.
Schnitt durch eine Falte des Plexus chorioideus (Mensch). 500mal vergr. Technik Nr. 102c, S. 273.
Das gefäßreiche, lockere Gewebe der Pia mater bereitet der Fortleitung von Erkrankungen wenig Widerstand. Sind einmal krankheitserregende Stoffe längs der Blut- oder Lymphbahn in dieses Gebiet gelangt, so breiten sie sich meist rasch über große Flächen des Gehirns und Rückenmarkes aus und verursachen die sogenannte Hirnhautentzündung.
Mit dem pialen Bindegewebe unmittelbar in Zusammenhang stehen die Telae chorioideae und die Plexus chorioidei, die, in die Ventrikelhohlräume hineinhängend, für den Stoffwechsel des Gehirns anscheinend von großer Wichtigkeit sind. Das äußerst dichte Netz der Gefäßkapillaren (Fig. 160), von zartem Bindegewebe umschlossen, bildet hier Läppchen, die von einer Lage kubischer Epithelzellen überkleidet sind. Diese Epithelzellen (Fig. 161) sind wahrscheinlich für die Bereitung der Ventrikelflüssigkeit und damit natürlich auch des gesamten Liquor von großer Bedeutung; darauf weisen häufig anzutreffende Einschlüsse (Fett, Pigment, künstliche, der Blutbahn zugeführte Farbstoffe) hin, die das Zytoplasma dieser Zellen erfüllen (Fig. 161). Beim Neugebornen besitzen sie, wie die Ependymzellen flimmernde Anhänge.
Das Epithel ist entwicklungsgeschichtlich ein Teil der Hirnwand, die durch das gefäßreiche Bindegewebe in die Ventrikelhohlräume vorgewölbt wird; ist also als ein besonders differenzierter Teil der Matrix (siehe S. 241) zu betrachten.
Wie der Liquor cerebrospinalis durch die Tätigkeit der Telae und der Plexus höchstwahrscheinlich mit neuen Stoffen versehen wird, so besitzt er auch die Möglichkeit, verbrauchte Stoffe an die Blutbahn abzugeben. Als solche Orte sehen viele Autoren die Arachnoidealgranulationen (Pacchioni) an; dies sind hernienartige Ausbuchtungen der Arachnoidea, welche, die verdünnte Dura mater vor sich herstülpend, in die venösen Sinus der Dura hineinragen.
Gelangen giftige Stoffe unmittelbar in den Liquor hinein, so entfalten sie ihre Wirkung auf das zentrale Nervensystem in ungleich stärkerer Weise, als wenn sie in der Blutbahn an das Nervensystem herankommen. So gelingt es, ganze Teile des Nervensystems vorübergehend dadurch auszuschalten, daß man lähmende Substanzen (Narkotika) unmittelbar dem Liquor einverleibt. Der Plexus chorioideus hat also eine ähnliche Bedeutung für die Isolierung des Nervensystems wie die Grenzhäute der Glia, die den unmittelbaren Übergang von Stoffen aus der Blutbahn in das Nervengewebe regulieren. Schaltet man den Plexus aus oder umgeht man ihn, so ist das Nervengewebe der Einwirkung irgendwelcher Substanzen preisgegeben.
Peripheres Nervensystem. Nerven.
Die zerebrospinalen Nerven bestehen zumeist aus markhaltigen Nervenfasern von verschiedener Dicke und nur vereinzelten marklosen Nervenfasern; sie erscheinen deshalb bei auffallendem Lichte weiß.
Ganglienzellen finden sich regelmäßig im Verlauf einzelner Zerebrospinalnerven, z. B. im N. glossopharyngeus. Auch in vorderen (ventralen) Spinalnervenwurzeln sind solche Zellen gefunden worden.
Die Vereinigungsweise der Nervenfasern zeigt viele Übereinstimmung mit derjenigen der quergestreiften Muskelfasern, da auch ihnen durch Bindegewebe Schutz vor der Umgebung und eine Zuleitung von Ernährungsbahnen gewährleistet wird. Dementsprechend umhüllt ein aus dicken Bindegewebsbündeln und zahlreichen elastischen Fasern gebildetes, oft Fettzellengruppen enthaltendes Gewebe, das Epineurium (Fig. 162), den ganzen Nerven. Ins Innere der Nerven ziehende, bindegewebige Fortsetzungen des Epineurium umhüllen die (sogenannten sekundären) Nervenfaserbündel, deren jedes von dem recht derben Perineurium umfaßt wird. Dieses besteht aus feineren, konzentrisch gekrümmten, längsverlaufenden Bindegewebslamellen, elastischen Fasern und Häutchen, die von zusammenhängenden Lagen platter Bindegewebszellen gebildet werden. Das Perineurium setzt der Präparation einen beträchtlichen Widerstand entgegen. Vom Perineurium ausgehende Septa dringen ins Innere des (sekundären) Nervenfaserbündels: man hat sie Endoneurium (Endoneurallamellen der Nervenbündel) genannt; sie bestehen vorzugsweise aus Bindegewebsbündeln, elastischen Fasern und nur da und dort vorkommenden Häutchen platter Zellen. Vom Endoneurium endlich zweigen sich von diesen wiederum feine Blätter, die „Fibrillenscheiden“ (= Endoneuralscheiden der Nervenfasern) ab, welche ähnlich dem Perimysium der einzelnen Muskelfaser jede einzelne Nervenfaser umgeben[105]. Sie bestehen im wesentlichen aus längs verlaufenden Bindegewebsbündeln. Die genannten Hüllen stehen mit Fortsetzungen der harten und weichen Hirnhaut in direkter Verbindung.
Fig. 162.
Stück eines Querschnittes des Nervus medianus des Menschen. 30mal vergr. Technik Nr. 103, S. 273.
Teilungen (d. h. Kollateralen) der peripherischen Nervenfasern kommen während des Verlaufes nicht vor (erst gegen das Ende); dagegen zweigt sich nicht selten eine verschieden große Anzahl von Nervenfasern von einem Nervenfaserbündel ab, um sich einem anderen Nervenfaserbündel anzuschließen. Daraus resultiert ein spitzwinkeliges Geflecht von Faserbündeln.
Die sympathischen Nerven sind teils mehr weiß, teils mehr grau, was von der größeren oder geringeren Anzahl feiner markhaltiger Nervenfasern herrührt, so enthalten z. B. die Nn. splanchnici viele markhaltige Nervenfasern; in den grauen Sympathikusnerven, z. B. in den Zweigen der Bauch- und Beckengeflechte sind sehr wenige, feinste markhaltige, dagegen viele marklose Nervenfasern vorhanden. Ein Teil der markhaltigen Nervenfasern sind Fortsetzungen von Spinalnerven, ein anderer Teil sind Nervenfortsätze sympathischer Nervenzellen; auch lang ausgezogene Dendriten sympathischer Nervenzellen finden sich zuweilen im Verlaufe sympathischer Nerven (siehe auch S. 261). Ihre Vereinigung geschieht durch Bindegewebe, durch welches sie zu Bündeln zusammengehalten werden.
Die größeren Blutgefäße verlaufen innerhalb des Epineurium in longitudinaler Richtung und bilden langgestreckte Kapillarnetze, deren Träger das Peri- und Endoneurium sind.
Fig. 163.
Stück eines Querschnittes des Nervus medianus des Menschen. 300mal vergr. Technik Nr. 103, S. 273.
Die Lymphbahnen finden sich in den kapillaren Spalten zwischen den Lamellen des Perineurium und zwischen den einzelnen Nervenfasern, so daß jede Nervenfaser von Lymphe umspült ist. Sie stehen nur in Zusammenhang mit dem Subdural- und Subarachnoidealraum; gegen die die Nerven umgebenden Lymphgefäße sind sie geschlossen. Gelangen einmal krankheitserregende Stoffe in diese Bahnen hinein, so breiten sie sich längs der Nerven über große Strecken aus.
Ganglien.
Unter Ganglien verstehen wir im Verlaufe der peripherischen Nerven eingeschaltete Ganglienzellengruppen, die meist makroskopisch sichtbar sind. Alle Ganglien bestehen aus Nervenfasern, die zu kleinen Bündeln vereint sind und zwischen sich die teils in Längsreihen, teils in rundlichen Gruppen gelagerten Ganglienzellen fassen. Eine bindegewebige Hülle, die Fortsetzung des Perineurium, umgibt die äußere Oberfläche des Ganglion und sendet Nerven- und Ganglienzellen umfassende Fortsetzungen ins Innere des Ganglion. Die Ganglien sind sehr reich an Blutgefäßen, deren Kapillaren die einzelnen Zellen umspinnen. Hinsichtlich des feineren Baues bestehen Unterschiede zwischen den Spinalganglien und den sympathischen Ganglien.
Die Spinalganglien besitzen große runde, meist pigmentierte Ganglienzellen, die konstant den Apparato reticulare (S. 138) und einen bläschenförmigen, mit einem großen Kernkörperchen versehenen Kern einschließen. Jede Zelle ist von einer „kernhaltigen Hülle“ umgeben, welche aus platten, zuweilen sternförmigen, konzentrisch geschichteten Bindegewebszellen besteht und als Fibrillenscheide auf den Fortsatz der Ganglienzelle übergeht. Nach innen von dieser Hülle liegt eine homogene Membran, „Kapsel“, deren Innenseite mit einer meist einfachen Schicht von Zellen „Mantelzellen“ (Fig. 165) bekleidet ist. Es sind Fortsetzungen der Schwannschen Zellen des Neurilemm (S. 144) und wie diese der Glia zugehörig. Fast alle Nervenzellen der Spinalganglien sind in embryonaler Zeit bipolar, die Fortsätze entspringen an den entgegengesetzten Polen der Zelle. Im Verlaufe der Entwickelung verdünnt sich der Zellkörperabschnitt, von dem die beiden Fortsätze ausgehen zu einem Stiel (Fig. 84), der somit die zellulipetale und die zellulifugale Bahn der ursprünglichen beiden Fortsätze enthält, so wird die Zelle unipolar; zu einer T-Zelle. Außer dieser unipolaren Zellform enthalten die Spinalganglien noch andere, scheinbar multipolare, die wahrscheinlich dem sympathischen Nervensystem zugehören.
Unter den unipolaren Zellen unterscheiden wir a) große runde Zellen; ihr von einer kegelförmigen Zytoplasma-Erhebung entspringender Fortsatz ist spiralig oder knäuelförmig gewunden, zieht dabei bogenförmig um die Zelle; bald nach seinem Austritt aus der Kapsel wird seine Neurilemmhülle markhaltig. Nach Abgabe einiger feiner Kollateralen (Fig. 166, 2 C) teilt er sich regelmäßig nach kürzerem oder längerem Verlaufe im Niveau eines Schnürringes T- oder Y-förmig in zwei (Fig. 166, 1) oder drei (Fig. 166, 2) Äste.
Jeder der beiden Äste kann sich noch einmal teilen; von den daraus hervorgehenden Zweigen des peripherischen Astes verläuft dann der eine im ventralen, der andere im dorsalen Ramus des Spinalnerven (Fig. 166, 3).
Fig. 164.
Längsschnitt durch ein Spinalganglion einer Katze. 18mal vergrößert. Technik Nr. 104. S. 273.
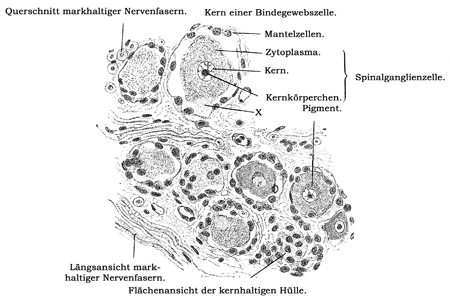
Fig. 165.
Stück eines Querschnittes des Ganglion Gasseri des Menschen. 330mal vergrößert. Fortsätze sind an solchen Schnitten nicht zu sehen. Bei × sieht man den Tigroid (S. 137) -freien Teil der Zelle, von welchem der Neurit ausgeht. Technik Nr. 104, S. 273.
Spitzwinkelig entspringende Kollateralen können, sich vielfach windend, Knäuel bilden (Fig. 166, 3 Kn), von welchen dann in kugelige Verdickungen (siehe unten S. 263) endigende Fäden ausgehen können. Aus diesem Grunde und weil sie bei jungen Menschen völlig fehlen, ist man geneigt, sie als eine Varietät der unter 2a beschriebenen Zellen mit Regenerationserscheinungen anzusehen. Andererseits werden sie als gleichwertig den bei Tieren beschriebenen interstitiellen Glomeruli als im Bindegewebe frei auslaufende Nervenendverästlungen betrachtet. Auch andere, vielleicht von Zerebrospinalnerven kommende, ähnliche Endapparate sind beschrieben worden.
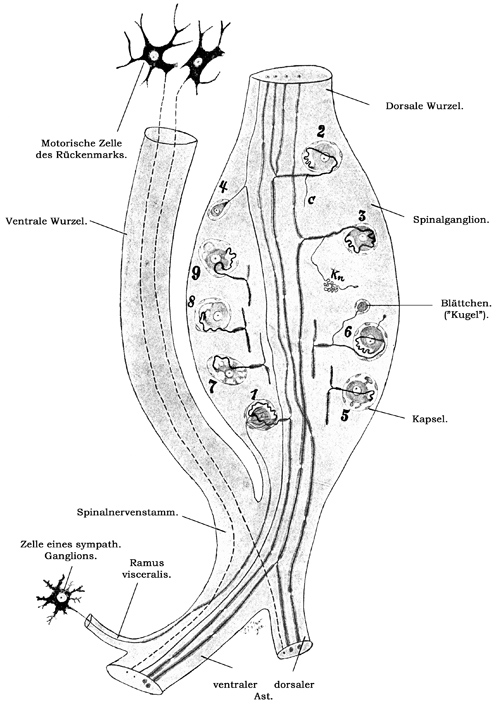
Fig. 166.
Schema der nervösen Teile eines Spinalganglion des Menschen.
A. Unipolare Zellen.
1, 2, 3 große Zellen,
4 kleine Zelle.
B. Scheinbar multipolare Zellen.
5 Z. mit kurzem Dendriten,
6 Z. mit langem Dendriten,
7 zerrissene Zelle,
8, 9 gefensterte Zellen.
Der eine derselben kommt als Achsenzylinder einer sensiblen Faser aus der Peripherie des Körpers, entspricht also einem Dendriten, der andere gewöhnlich schwächere Ast ist der wahre Neurit (S. 139) und verläuft als Bestandteil einer dorsalen Rückenmarkswurzel zum Rückenmark, in dessen grauer Substanz er verästelt endet (S. 233). Diese Zellen stellen die Hauptmasse der Spinalganglienzellen, etwa 70%, dar.
Zu dieser Kategorie gehören die nicht sehr häufigen, aber im menschlichen Vagusganglion ständigen, großen Nervenzellen, die von gleicher Größe wie die unter a) geschilderten sich von diesen unterscheiden durch den Mangel spiraliger oder knäuelförmiger Windungen des Fortsatzes, der direkt aus der Kapsel hervortritt und sich bald darauf in seine beiden Äste teilt.
b) kleine birnförmige Zellen ohne Spirale oder Knäuel des Fortsatzes, der sich in einen dünneren zellulifugalen (zentripetalen) und einen dickeren zellulipetalen Ast teilt und im ganzen Verlauf keine Markscheide besitzt (Fig. 166, 4). Sie sind besonders häufig in den (S. 260) aufgezählten Ganglien der Gehirnnerven.
Als Entwicklungsformen der unipolaren Zellen sind endlich zu betrachten: bipolare, in ihrer Form den Fig. 84, 1 abgebildeten Elementen gleichende Ganglienzellen mit feinerem zellulifugalen Fortsatz. Sie kommen beim erwachsenen Menschen nur im Vagus vor.
c) Die sogenannten „gefensterten Zellen“. Dies sind Ganglienzellen, von deren Zytoplasma feinere oder dickere Fortsätze entspringen, die wieder ins Zytoplasma zurücklaufen können (Fig. 166, 9): in der Regel aber treten sie in den Fortsatz (Fig. 166, 8) und erwecken so den Anschein, als wenn dieser mit mehreren Wurzeln aus der Zelle entspränge. Eine wirkliche Fensterung kommt beim Menschen seltener zum Vorschein, weil diese Fortsätze oft fein sind; dagegen sind bei anderen Vertebraten z. B. beim Hund die Fortsätze so dick, daß die Zelle wie gefenstert erscheinen kann. Daher der Name.
Diese Zellenform kommt beim erwachsenen Menschen fast ausschließlich im Ganglion nodosum vor und wird mit zunehmendem Alter häufiger. Ihr häufiges Vorkommen bei gesunden und bei jungen Tieren spricht gegen die Deutung, daß hier pathologische Elemente vorliegen.
Zu den gefensterten Zellen gehören wohl auch jene unipolaren Zellen, deren Neurit sich alsbald spitzwinkelig in mehrere Äste teilt, die dann wieder zu einem Strange zusammenfließen.
b) Als Altersformen werden zumeist die sogenannten „zerrissenen Zellen“ aufgefaßt, die von einer verdickten Hülle umschlossen sind, innerhalb deren viele, kurze, sehr verschieden gestaltete „Dendriten“ (Fig. 166, 7) liegen. Diese sind wahrscheinlich durch Arrosion von der Peripherie her entstanden, zugrunde gehende vom Rande aus angenagte (S. 71) Zellen, wofür auch der Umstand spricht, daß sie nur bei alten, über 65 Jahre zählenden Menschen und auch da nicht konstant vorkommen. Sie sind am häufigsten im Ganglion nodosum vagi. Endlich finden sich hier auch Nervenzellen mit kurzen „Dendriten“, die innerhalb der Hülle (siehe oben) verdickt endigen (Fig. 166, 5). Ob diese Zellen den bei anderen Wirbeltieren beobachteten „multipolaren Zellen“ gleichwertig sind, ist um so fraglicher, als letztere außerhalb der Hülle endigende, fein auslaufende Dendriten besitzen. Sie sind durch Übergänge verbunden mit Ganglienzellen, von deren Körper, unter Durchbohrung der Hülle, oder von deren Neurit in sehr verschiedener Entfernung vom Zellkörper feine Fortsätze entspringen, die, dicker werdend, in eine sehr verschieden große Kugel auslaufen (Fig. 166, 6), die zuweilen sogar in einer „Kapsel“ (S. 256) eingeschlossen ist. Diese Zellen kommen auch in Spinalganglien vor und sind auch im Ganglion jugulare des Vagus sehr zahlreich vorhanden, finden sich ferner auch im zentralen Nervensystem.
Die Spinalganglienzellen sind zuweilen von feinen Fasernetzen umsponnen (Fig. 166, 1), welche wahrscheinlich die marklosen Endigungen markhaltiger, von wenigen, sympathischen Nervenzellen (aus den sympathischen Ganglien) kommender Nervenfasern sind; Äste dieser Fasern treten auch zu den Blutgefäßen.
Die durch sorgfältige Zählungen ermittelte Tatsache, daß in einem Spinalganglion viel mehr Ganglienzellen sind, als sich Querschnitte markhaltiger Nervenfasern in der dorsalen Wurzel finden, ließ schon früher vermuten, daß im Spinalganglion noch weitere Komplikationen stecken. Diese Vermutung erweist sich als richtig durch den Befund, daß die Neuriten der kleinen unipolaren Ganglienzellen meist marklos sind (Fig. 148, 4). Ob es auch Nervenfasern gibt, welche das Spinalganglion durchsetzen, ohne mit dessen Zellen in Beziehung zu treten, ist unsicher. Bei jungen Hühnerembryonen sind solche von Vordersäulenzellen kommende Fasern nachgewiesen worden; sie konnten aber bei keinem Säugetier wiedergefunden werden.
Den gleichen Bau wie die Spinalganglien besitzen: Das Gangl. Gasseri, das Gangl. nodosum n. vagi, das Gangl. petros. n. glossopharyngei und das Gangl. geniculi n. facialis. Die Ganglien des N. acusticus (G. nervi cochleae et nervi vestibuli) dagegen enthalten bipolare Ganglienzellen, die also etwa der Form entsprechen, die ursprünglich allen Spinalganglienzellen zukommt (Fig. 84). Im Ganglion jugulare des N. vagus sind die multipolaren (wahrscheinlich sympathischen) Ganglienzellen häufiger zu finden.
Die sympathischen Ganglien, zu denen auch die vorgeschobenen Ganglien der Kopfnerven zu rechnen sind (G. ciliare, sphenopalatinum, oticum, submaxillare), enthalten verschiedene Formen multipolarer Zellen.
Solche Zellen finden sich in verschiedener Anzahl auch in den Spinalganglien, treten hier aber an Zahl gegen die typischen „unipolaren“ Zellen sehr zurück.
Man unterscheidet unter den sympathischen Ganglienzellen meist drei Typen, deren Fortsätze sich verschieden verhalten, ohne daß man angeben kann, welche biologische Bedeutung diesen Unterschieden zuzumessen ist.
I. Typus (Fig. 167, 1 u. 168). Rundlich ovale, zuweilen platte Zellen mit vielen kurzen, oft flach gedrückten Dendriten, die sich zwischen den Kapselzellen verzweigen, aber nicht über die Hülle hinaustreten; man nennt sie auch Kronenzellen. Ihr mit feinen Kollateralen versehener Neurit tritt aus dem Ganglion als marklose Nervenfaser in ein Nervenstämmchen und endet zumeist an glatten Muskelfasern.
II. Typus (Fig. 167, 2). Zellen, deren Dendriten sich vorwiegend nach einer Seite hin erstrecken und entweder mit benachbarten Zellen ein Geflecht bilden oder in längerem Verlaufe in ein Nervenstämmchen eintreten, wo sie sich ähnlich wie Neuriten verhalten. Diese Zellen hält man für rezeptorische Elemente, wenngleich ihre Endigungsweise nicht feststeht.
III. Typus (Fig. 167, 3). Diese Zellen, die besonders häufig in den Ganglien des Grenzstranges, dem Ganglion stellatum, den prävertebralen Ganglien, dem Ganglion solare und mesentericum inferius vorkommen, unterscheiden sich von den Zellen des I. Typus durch die langen, die Kapsel durchbrechenden Dendriten. Sie werden auch als Sternzellen bezeichnet (Fig. 169).
Weiteren Forschungen muß es vorbehalten bleiben, eine bessere Einteilung der sympathischen Ganglienzellen zu geben. Sie wird erst möglich sein, wenn wir die Endigungsweise der Dendriten und Neuriten besser kennen, als dies heute der Fall ist.