II. Abschnitt. Mikroskopische Anatomie und spezielle Technik. (continued 3)
Reading edition
Im übrigen suche man niemals nach dem ersten flüchtigen Eindruck zu entscheiden, sondern begründe jede Gewebsdiagnose nach sorgfältiger Beachtung der Strukturen eingehend. Vor allem muß dringend davor gewarnt werden, Strukturen einzig nach dem Farbton zu bestimmen, den sie in den Präparaten angenommen haben; die Färbung ist zwar ein wichtiges, fast unentbehrliches Hilfsmittel der Histologie, hat aber keinen selbständigen diagnostischen Wert.
Fußnoten:
II. Mikroskopische Anatomie der Organe.
Zum Aufbau von Organen werden stets verschiedene Gewebearten verwandt; die Art der Zusammensetzung, das Vorwiegen bestimmter Gewebearten vor anderen bestimmen den Charakter des Organes.
Wir beginnen die Betrachtung mit denjenigen Organen, die durch die Art ihrer Aufgabe im Aufbau des Körpers sehr verbreitet sind; dies sind I. das Zirkulationssystem, II. das Bewegungssystem und III. das Nervensystem.
I. Das Zirkulationssystem.
Der Stoffwechsel wird in allen Geweben durch Vorgänge ermöglicht, die eine Art von Diffusion darstellen müssen, wenngleich eine spezifische Anteilnahme der Zytoplasmen die Diffusion beeinflussen kann. Diffusion wird aber nur in relativ dünnen Schichten ausreichen, um das Stoffwechselbedürfnis zu befriedigen; dickere Substanzschichten können nur dann mit einem Stoffaustausch durch Diffusion auskommen, wenn ihr Stoffwechsel sehr träge ist (Knorpel). Überall sonst dient dem schnelleren Stoffaustausch ein vorgebildetes Röhrensystem, dessen Gesamtheit zu einem kunstvollen Apparat ausgebaut ist.
In diesem Röhrensystem wird nicht nur Flüssigkeit, sondern auch eine große Zahl freier Zellen bewegt, die nach ihrer Ablösung aus dem plasmodialen Verbande zum Teil äußerst wichtige Aufgaben zu erfüllen haben. Je nach ihrer Zusammensetzung nennen wir diese Flüssigkeit Blut oder Lymphe. Da beide in andauerndem Strome durch alle Teile des Körpers fließen, hierbei Stoffe aus den verschiedensten Organen aufnehmen, andere Stoffe abgeben, so ändert sich die Zusammensetzung des Blutes, sowie der Lymphe fortwährend.
Die ersten Gefäße entstehen in engstem Zusammenhange mit dem Plasmodium, das den Mutterboden für alle Stützgewebe abgibt (s. S. 91). Deshalb sind alle Gefäße von Stützgewebe umschlossen; dieses vermittelt auch immer den Diffusionsaustausch zwischen Lymphe oder Blut einerseits und allen anderen Geweben andererseits. Der Blutgefäßbindegewebsapparat wird bei allen Organen vielfach als Einheit (Stroma[90]) den epithelialen Bestandteilen (Parenchym[91]) gegenübergestellt.
Auch die freien Blut- und Lymphzellen stammen durchweg vom embryonalen Plasmodium ab, wenn auch im einzelnen ihr Entwicklungsgang (s. u.) sehr verschiedenartig gedeutet wird.
a) Die Körperflüssigkeiten.
In mancher Beziehung ähnlich zusammengesetzt, zeigen Blut und Lymphe doch nach Verteilung, Aufgaben und Aussehen grundlegende Unterschiede.
Die Lymphe steht den Gewebssäften sehr nahe und entnimmt Stoffe und Zellen aus diesen; ihre langsame Strömung kennt nur eine Richtung: Abtransport aus den Geweben in die Blutbahn. Die Lymphe ist relativ zellarm.
Das Blut ist abgesehen von seiner Farbe vor allem durch den Kreislauf charakterisiert, der es nicht nur aus den Geweben fort-, sondern auch nach den Geweben hinführt. Das Blut befindet sich in sehr rascher Bewegung und besitzt, wohl im Zusammenhang mit seinem großen Zellreichtum viel mannigfaltigere Aufgaben als die Lymphe.
Blut und Lymphe gemeinsam ist die Zusammensetzung aus einer Flüssigkeit, dem Plasma, und aus freien Zellen.
Das Plasma ist eine wechselnd zusammengesetzte, wässerige Lösung der verschiedensten Stoffe (Salze, Eiweiße, Fette u. a.), unter denen das sogenannte Fibrinogen morphologisch das größte Interesse darbietet.
Nach dem Tode oder nach dem Ausströmen aus den Gefäßen (auch nach Veränderung der inneren Gefäßoberfläche) gerinnen Blut und Lymphe durch Überführung des Fibrinogens in Faserstoff (Fibrin). Bei der Gerinnung werden die freien Zellen größtenteils mit dem Fibrin zusammengebacken (beim Blut zu dem sogenannten Blutkuchen, Cruor sanguinis), während eine glashelle Flüssigkeit den fibrinfreien Rest des Plasmas darstellt und Serum genannt wird.
Der Blutkuchen ist rot und besteht aus allen farbigen, den meisten farblosen Blutzellen (s. u. S. 162) und dem Faserstoffe, der sich mikroskopisch als ein Filz feiner Fasern erweist; die Fasern verhalten sich chemisch ähnlich den Fibrillen des leimgebenden Bindegewebes. Das über dem Blutkuchen sich ansammelnde Blutwasser ist farblos und enthält einige farblose Zellen.
An Zellen enthält das Blut sämtliche unten besprochenen Formen, während die Lymphe nur sogenannte Leukozyten enthält. Außer diesen finden sich nämlich im Blute die farbigen Blutzellen (farbige Blutkörperchen, Erythrozyten) (Fig. 98). Dies sind weiche, dehnbare, sehr elastische Gebilde und besitzen eine glatte, schlüpfrige Oberfläche. Über ihre Gestalt gehen die Ansichten noch auseinander. Fehlen gröbere Veränderungen (s. u.), so haben sie beim Menschen und den Säugetieren zumeist die Form einer bikonkaven Scheibe, in anderen Fällen sehen sie aus wie eine eingedellte Blase („Glockenform“) oder wie ein kreisrundes Näpfchen.
Von größtem Einfluß auf die Gestalt dieser Zellen ist die Umgebung; jede Veränderung macht sich hier stark geltend. An diesen freien Zellen lassen sich daher eine Reihe allgemeiner Eigenschaften der lebenden Substanz besonders gut studieren (s. u.). Die leichte Beeinflußbarkeit der Erythrozyten erklärt zum Teil die Meinungsverschiedenheiten über ihre Form.
In engen Passagen wird ihre Gestalt vielfach geändert, kehrt aber, vom Druck befreit, zur Ausgangsform zurück. Außerdem finden sich im menschlichen Blute noch kuglige farbige Blutzellen; sie sind kleiner (5 µ) und nur in geringer Anzahl vorhanden; bei Lama und Kamel haben die Erythrozyten die Gestalt ovalen, schwach konvex-konkaver Scheiben.
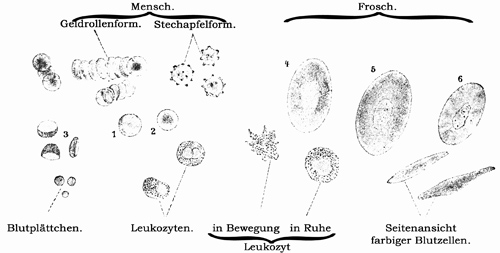
Fig. 98.
Blutzellen. 600mal vergrößert. 1. farbige Blutzelle bei tiefer Einstellung, 2. bei hoher Einstellung des Objektivs, 3. Seitenansicht farbiger Blutzellen, 4. farbige Blutzelle ganz frisch, Kern wenig deutlich, 5. einige Minuten später, Kern deutlich sichtbar, 6. nach Wasserzusatz. Technik Nr. 62, 65, 66, S. 193 und 196.
Ihr Flächendurchmesser beträgt beim Menschen durchschnittlich 7,5 µ, ihr Dickendurchmesser 1,6 µ. Die farbigen Blutzellen unserer einheimischen Säugetiere sind alle kleiner; die größten sind diejenigen des Meerschweinchens (7,48 µ) und des Hundes (7,5 µ).
Der Zelleib des farbigen Blutkörperchens erscheint lebend absolut homogen, besitzt aber wahrscheinlich einen sehr verwickelten Aufbau. Man unterscheidet Gerüstsubstanzen (sie enthalten Lezithin und Cholesterin), die wohl das ganze Innere durchziehen und sich an der Oberfläche zu einer membranartigen Hülle verdichten; die Farbe rührt von dem offenbar zwischen den Gerüstsubstanzen angebrachten hämoglobinhaltigen Endosoma her.
In diesem beobachtete Körnchen sind teils Kernrudimente (?), zum Teil sind sie Absterbenszeichen oder (durch Osmiumsäure hervorgerufene) Kunstprodukte.
Das Hämoglobin verleiht den Blutzellen die gelblichgrüne Farbe.
Nur sehr viele übereinanderliegende Blutzellen sehen rot aus.
Das auffallendste Merkmal der farbigen Blutzellen der Säugetiere ist ihre Kernlosigkeit, wodurch sie sich von den kernhaltigen Erythrozyten der Fische, Amphibien, Reptilien und Vögel unterscheiden. Die letzteren sind oval, meist größer (beim Frosch 22 µ lang, 15 µ breit); im übrigen zeigen sie die gleichen Eigenschaften wie diejenigen der Säugetiere.
Auch die Erythrozyten der Säugetiere und des Menschen entstehen aus kernhaltigen Zellen, den Erythroblasten (s. Knochenmark), die aus indifferenten Teilen des Plasmodiums an verschiedenen Orten des Körpers gebildet werden.
Die ersten Blutzellen entstehen in der sogenannten Area vasculosa des Dottersackes, in späterer Embryonalperiode beteiligt sich in bedeutendem Maße die Leber an der Erythrozytenbildung; beim Erwachsenen ist es vorwiegend das rote Knochenmark, das dauernd Ersatz für verbrauchte Erythrozyten liefert. Am deutlichsten kommt dies nach schweren Blutverlusten zum Ausdruck; dann finden sich im Blute viele kernhaltige Erythroblasten, weil die Ersatztätigkeit überstürzt abläuft, so daß die Reifung, die unter normalen Umständen mit dem Verluste des Kernes (durch Auflösung oder durch Ausstoßung desselben) einhergeht, unterbrochen wird.
Die Erythrozyten sind also in morphologischem Sinne keine vollwertigen Zellen, weil ihnen der Kern fehlt; so fehlt ihnen auch die Fähigkeit der Vermehrung und ihre Lebensdauer ist beschränkt. Es gehen andauernd zahlreiche Erythrozyten zugrunde und werden in manchen Organen (besonders Milz) abgebaut und beseitigt.
Ihre wichtige Aufgabe ist die innere Atmung, d. h. die Übertragung des Sauerstoffes aus der Atmungsluft (s. Lunge) an alle Gewebe; sie tauschen den Sauerstoff dort gegen Kohlendioxyd ein. Diese Fähigkeit ist an den Blutfarbstoff, das Hämoglobin, gebunden.
Dieser Farbstoff kristallisiert unter bestimmten Umständen, und zwar bei fast allen Wirbeltieren in rhombischen Systemen; die Gestalt der Kristalle ist bei verschiedenen Arten sehr verschieden, beim Menschen hauptsächlich prismatisch.
Das Hämoglobin geht leicht in Zersetzung über. Eines dieser Zersetzungsprodukte ist das Hämatin, welches weitere Umwandlungen zu Hämatoidin und Hämin erfahren kann. Die Kristalle des Hämatoidin, welche sich innerhalb des Körpers in alten Blutextravasaten, z. B. im Corpus luteum finden, sind rhombische Prismen von orangeroter Farbe. Die Kristalle des Hämin sind, wenn gut entwickelt, rhombische Täfelchen oder Bälkchen von brauner Farbe; oft sind sie sehr unregelmäßig gestaltet (Fig. 99); sie sind in forensischer Beziehung von großer Wichtigkeit (s. Technik Nr. 69, S. 197).
Bei der Untersuchung frischen Blutes (s. Technik Nr. 62, S. 193) drängen sich dem Beobachter eine Reihe von Erscheinungen auf, die auf allgemeine Eigenschaften der lebenden Materie zurückzuführen sind. Vor allem sind die Erythrozyten, wie alle anderen Zellen auch, gegen jede Änderung des Salzgehaltes der Flüssigkeit, in der sie sich befinden, äußerst empfindlich.
Man hat sich vorgestellt, daß jede Zelle von einer (unsichtbaren) halbdurchlässigen Membran umschlossen sei, die für Salze nur sehr schwer, für Wasser dagegen leicht durchlässig sei. Nur wenn die osmotische Gesamtkonzentration an Salzen im Zellinnern und in der Außenflüssigkeit gleich ist, behält die Zelle ihr Volum bei. Bei Steigerung der Salzkonzentration in der Umgebung (also in hypertonischer Lösung) schrumpft die Zelle, weil sie so lange Wasser abgeben muß, bis die Salze im Innern ebenso konzentriert sind wie außen. Sinkt die Salzkonzentration in der Umgebung (also in hypotonischer Lösung), so verdünnt die Zelle durch Wasseraufnahme ihre Salzlösung und schwillt an.
Man nennt eine Salzlösung, die annähernd die Gestalt und die Lebenseigenschaften der Zellen erhält, isotonisch (auch „physiologisch“). Für Säugetiere entspricht diesen Forderungen annähernd eine 1%ige Kochsalzlösung.
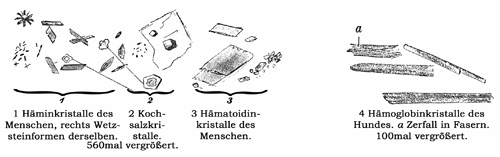
Fig. 99.
Technik Nr. 69, S. 197.
Viel besser ist aber das Arbeiten mit der physiologischen Salzlösung nach Ringer (s. S. 4), da sie in ihrer Zusammensetzung derjenigen der Körpersäfte näher kommt.
Bei Kaltblütern ist in der Regel eine schwächere Lösung isotonisch (beim Frosch z. B. 0,65%iges Kochsalz, bei Kaulquappen in den verschiedenen Altersstufen 0,25-0,35%ige Lösungen).
Hypotonische Lösungen, am stärksten reines Wasser, bringen die roten Blutkörperchen zunächst stark zum Aufschwellen, bewirken dann rasch den Austritt innerer Zellsubstanzen, darunter vor allem des Hämoglobins; das Blut wird lackfarben. Den gleichen Effekt kann man mit einer Anzahl von Giften erzielen (Saponine, Chloroform, Äther u. a.); doch beruht die Wirkung hier wahrscheinlich auf der Lösung der Blutkörperchenlipoide, wodurch die Zellen zerstört werden.
Als Lipoide bezeichnet man die als „Gerüstsubstanzen“ (s. S. 159) betrachteten Lezithine und Cholesterine.
Auch hypertonische Lösungen zerstören schließlich die Erythrozyten; doch bewirken sie vorher eine Schrumpfung. Vermutlich sind Erscheinungen wie die „Geldrollenbildung“ und die „Stechapfelformen“, die man in frischen Präparaten (s. Technik Nr. 62, S. 193) häufig antrifft, darauf zurückzuführen, daß das Blutplasma durch Verdunstung eingedickt wird.
Kurz hinweisen können wir an dieser Stelle nur auf die Tatsache, daß auch artfremdes Blut auf die Erythrozyten giftig wirkt, sie auflöst und dadurch ebenfalls das Hämoglobin austreten läßt. Diese Reaktion spielt in der praktischen Medizin eine große Rolle.
Aus allem erkennt man, daß die Erythrozyten äußerst komplizierte Gebilde sind, die gegen die verschiedensten Einwirkungen eine hohe Empfindlichkeit aufweisen.
2. Die weißen Blutzellen (=farblosen Blutkörperchen, Leukozyten). Unter diesem Namen vereinigen wir zwei Hauptarten von Zellen: die Hämoleukozyten und die Lympholeukozyten (kurz Lymphozyten).
Es ist sehr zu bedauern, daß so viele Autoren den Namen „Leukozyten“ im Gegensatz zu „Lymphozyten“ anwenden. Das ist sprachlich ungerechtfertigt und muß zu Mißverständnissen führen. Der Name Leukozyt, die einfache Übersetzung der „weißen Blutzelle“, sollte als Gesamtname erhalten bleiben und nicht als Bezeichnung für eine besondere Art der weißen Blutzellen verwendet werden.
Gemeinschaftlich ist beiden Arten das Fehlen einer Membran und — wegen der Eigenschaft amöboider Bewegung — das Fehlen einer bestimmten Gestalt; nur im Zustand der Ruhe sind sie kuglig (Fig. 98). Die amöboide[92] Beweglichkeit äußert sich darin (Fig. 100), daß das Zytoplasma der Zelle feinere oder gröbere Fortsätze ausstreckt, die sich teilen, wieder zusammenfließen und auf diese Weise die mannigfaltigsten Gestalten erzeugen. Die Fortsätze können wieder zurückgezogen werden, oder sie heften sich irgendwo an und ziehen gewissermaßen den übrigen Zelleib nach sich; die Folge davon sind Ortsveränderungen, die man „Wandern“ der Zellen nennt. Die Fortsätze können auch Körnchen oder andere, besonders abgestorbene Zellen umfließen und so in den Zellenleib einschließen, ein Vorgang, der „Fütterung“ der Zelle genannt worden ist. Solche Zellen, welche die aufgenommenen Teile noch verändern, „verdauen“ können, werden Freßzellen, „Phagozyten“, genannt.
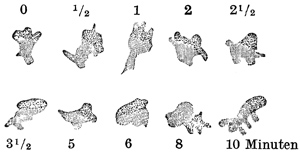
Fig. 100.
Leukozyt eines Frosches. 560mal vergrößert. Gestaltwechsel 10 Minuten lang beobachtet. 0, zu Beginn der Beobachtung. 1/2, 1/2 Minute später, usw. gezeichnet. Technik Nr. 68, S. 196.
Phagozytose kommt aber nicht nur bei Blutzellen vor, viele Gewebszellen besitzen diese Fähigkeit, die mit der „Speicherung“ gelöster Substanzen (s. S. 83) eng zusammenhängt, in ausgesprochenem Maße. Phagozytose ist also keineswegs abhängig von der freien Beweglichkeit der Zellen, sondern beruht auf einer allgemeinen Zytoplasmaeigenschaft, deren physikalische Grundlage wahrscheinlich Oberflächenphänomene sind, wenngleich wir sie noch nicht völlig übersehen können (s. darüber die physiologischen Lehrbücher).
Die Verbreitung der weißen Blutzellen ist eine überaus große; sie kommen nicht nur im Blut- und im Lymphgefäßsystem vor, sondern auch im Knochenmark, ferner massenhaft im retikulären Gewebe (S. 98), zerstreut im fibrillären Bindegewebe, endlich zwischen Epithel- und Drüsenzellen, wohin sie vermöge ihrer amöboiden Beweglichkeit gewandert sind.
In den Schleimhäuten wandern weiße Blutzellen in wechselnden Mengen durch das Epithel auf die freie Oberfläche und gehen dort zugrunde. Dabei liefern sie wahrscheinlich Stoffe, die als Schutzmittel gegen Mikroben und andere dem Körper schädliche Substanzen eine große Rolle spielen.
Verschieden sind beide Arten durch ihr Zytoplasma, das bei den Hämoleukozyten besondere Granula aufweist, während bei den Lymphozyten solche fehlen.
a) Die Hämoleukozyten zerfallen in zwei sowohl durch die Beschaffenheit ihres Zytoplasmas, wie auch ihres Kernes wohl unterscheidbare, nicht durch Übergänge verbundene Arten. Gemeinschaftlich ist beiden der exzentrisch gelegene, einfache Kern insofern, als er in den Hämoleukozyten des strömenden Blutes fast immer tief eingeschnitten oder gelappt (=polymorphkernig) ist.
Die Mehrkernigkeit wird oft vorgetäuscht dadurch, daß die feinen Verbindungsfäden der tiefeingeschnittenen Kerne übersehen werden, was besonders leicht bei Anwendung der die Kerne nicht so scharf färbenden Triazidlösung (S. 196) geschehen kann. Die in vielen, besonders in klinischen Arbeiten geschilderten „multinukleären“ oder zwei-, drei- usw. kernigen (Hämo-) Leukozyten sind in der größten Mehrzahl der Fälle polymorphkernig, d. h. sie haben einen aus 2, 3 usw., durch feine Fädchen verbundenen, Teilen bestehenden Kern. In diesem Sinne ist auch die Angabe zu verstehen, daß beim gesunden Menschen bis zu 50% der neutrophilen (Hämo-) Leukozyten „dreikernig“ sind.
Der Kern tritt in zwei durch Übergänge miteinander verbundenen Formen auf: als „kompakte“ Form, — hier kommt es zu keiner fadenförmigen Ausziehung der Kernmasse —, und als „gelappte“ Form, bei der zwei bis fünf ungleich große Lappen der Kernmasse durch feine kürzere oder längere Fäden miteinander verbunden werden (Fig. 101). Verschieden sind die beiden Hämoleukozytenarten zunächst durch die Art ihrer Granula, weiter aber auch durch besondere Eigentümlichkeiten ihrer Kerne. Das läßt sich am besten in Form folgender Tabelle darstellen. Man unterscheidet an den Hämoleukozyten der Menschen:
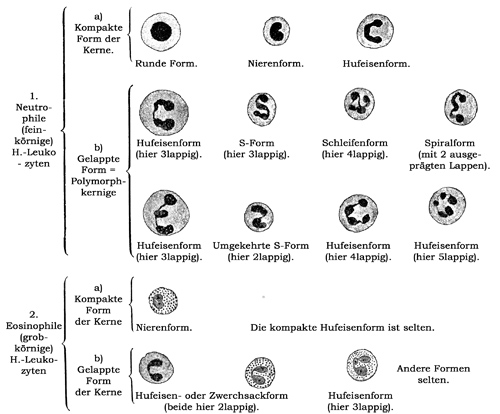
Fig. 101.
Alle Hämoleukozytenbilder stammen aus strömendem Blute des erwachsenen Menschen, die beiden letzten eosinophilen aus einem Schnitt durch eine Arterie der menschl. Darmsubmukosa, die anderen sind nach Technik Nr. 64 angefertigt. 900mal vergrößert.
Die Hämoleukozyten des Menschen sind also:
Die feinkörnigen H. sind die einzigen, deren Kern variiert, wirklich vielgestaltig (polymorph) genannt werden kann. Ihre kompakte Nierenform ist in strömendem Blute selten, die gelappten Formen bilden dort die Hauptmenge (65-70%) aller Hämoleukozyten. Im übrigen sind die feinkörnigen H. in der Milz, in den Lymphknoten, überhaupt im Körper weit verbreitet. Die grobkörnigen H. haben dagegen eine sehr wenig variierende Kernform. Ihre kompakte Form ist überhaupt in strömendem Blute selten, die gelappte Form bilden dort etwa 2-4% der Hämoleukozyten. Dagegen ist die kompakte Nierenform sehr häufig im Knochenmark, in den Blutlymphdrüsen und an vielen Stellen im Bindegewebe, woselbst der Kern oft fast rund ist.
Die feinkörnigen H. haben einen Durchmesser von 9-12 µ, (Mikrophagen), bei der amöboiden Bewegung sind ihre Fortsätze oft fein, spitz ausgezogen, der ganze Körper ist oft gestreckt. Die grobkörnigen H. haben einen Durchmesser von 8-14 µ. Ihre Fortsätze sind bei der amöboiden Bewegung dicker, plumper, der ganze Körper bleibt mehr rundlich.
Eine sehr bedeutende amöboide Bewegung kann die Kernform nicht in der Weise beeinflussen, daß sie eine kompakte in eine gelappte oder gar umgekehrt umwandelt. Dagegen vermag sie wohl die S-Form in jene der Schleife oder der Spirale überzuführen, wobei es sich mehr um eine Umlagerung der einzelnen Lappen handelt. Es ist wahrscheinlich, daß die kompakte Kernform die Jugendform, die gelappte dagegen die weiter entwickelte Form repräsentiert, welch letztere sich nicht mehr mitotisch teilen kann. Mehrkernige Hämoleukozyten gibt es im strömenden Blute gar nicht oder höchst selten, dagegen sind sie häufig in der Milz und in Lymphknoten.
Ob die „uninukleären Leukozyten“, bis zu 20 µ große Zellen („Makrophagen“) mit hellem, großem, rundem oder ovalem Kern und reichlichem, entweder neutrophil, oder gar nicht gekörntem Zytoplasma (Fig. 101, erste Querreihe, erste Zelle links [„Runde Form“]), zu den Hämoleukozyten gehören, ist unwahrscheinlich, ihre Abstammung von fixen Bindegewebszellen dagegen stellenweise erwiesen; sie werden deshalb auch als „Histiozyten“ bezeichnet (s. S. 93). Sie sind im strömenden Blute nur spärlich (1%); noch spärlicher (0,5%) sind im Blute die basophilen Leukozyten vorhanden, deren Kernform wie Körnung sehr unregelmäßig ist, und die wahrscheinlich zugrunde gehende Elemente sind.
Der Name Mastzelle für die zuletzt genannte Form ist schon wegen der Gefahr der Verwechslung mit der Bindegewebsmastzelle (S. 94) zu verwerfen. Daß auch dort die ganz anders gestalteten Granula basophil sind, macht eine Unterscheidung nach Farbreaktionen überhaupt verdächtig. Wir bedürfen derselben auch bei den Leukozyten um so weniger, als diese morphologische Merkmale (Granulagröße und Kernform) besitzen, die eine Unterscheidung sicherer ermöglichen. Auch der Name „Mastleukozyt“ ist schlecht, weil er keinerlei Beziehung zur Mästung besitzt.
b) Die Lymphozyten (Fig. 137A) besitzen ein ungekörntes Zytoplasma, das bei jungen Elementen in so geringer Menge vorhanden ist, daß es mit den gewöhnlichen Methoden kaum wahrgenommen wird und nur eine dünne Schale um den verhältnismäßig großen, runden oder einseitig leicht eingekerbten Kern bildet. Sie sind klein (4-7,5 µ), weniger beweglich und bilden 22-25% der im Blute zirkulierenden weißen Blutzellen. Größere Lymphozyten finden sich normalerweise im kindlichen Blute.
Durch besondere Methoden lassen sich auch hier spärliche Körnchen nachweisen, die aber keine echten Granula, sondern entweder Alterserscheinungen (?) oder Kunstprodukte zu sein scheinen. Neuerdings wird behauptet, daß Übergangsformen zu gekörnten Leukozyten vorkommen, die in strömendem Blute aber nicht nachzuweisen sind.
In praktischer Hinsicht gewinnt das verschiedene Verhalten der Hämoleukozyten und der Lymphozyten gegenüber der sogenannten Oxydasereaktion immer größere Bedeutung.
Diese Reaktion beruht auf der Bildung eines blauen, schwer wasserlöslichen Farbstoffes (Indophenolblau); dieser entsteht unter dem Einfluß oxydierender Fermente aus zwei farblosen Substanzen (α-Naphthol und Dimethyl-p-Phenylendiamin) und schlägt sich im Zytoplasma in der Form von feinsten, tiefblauen Körnchen nieder. Über die technische Ausführung der Reaktion siehe die Handbücher der Mikrotechnik.
Die Indophenolblaukörnchen bilden sich in frischen und formolfixierten Präparaten von allen Blutzellen nur in den Hämoleukozyten. Die Lymphozyten bleiben bei dieser Reaktion ungefärbt.
Dies Verhalten ermöglicht besonders in pathologischen Fällen oft eine deutliche Trennung beider Zellarten.
Die Entwicklung der Blutzellen beginnt zuerst in den Blutinseln; das sind Stränge farbloser Bildungszellen des Dottersackes. Von da ab gehen die Auffassungen der Autoren auseinander. Die einen, Verfechter der dualistischen (polyphyletischen) Abstammung der Blutzellen, nehmen an, daß eine frühzeitige Scheidung eintrete in Gefäßwand- (Endothel-) Zellen und in „primäre Erythroblasten“. Letztere werden bald durch eine zweite Generation, die „sekundären“ Erythroblasten ersetzt, die sich dann zu Erythrozyten umbilden (siehe Kap. Knochenmark). Endothelzelle und Erythroblast stehen also nicht im Verhältnis von Mutter zu Tochter, sondern sind Geschwister; ein Ursprung von Erythroblasten aus Endothelzellen ist deshalb sehr unwahrscheinlich. Die Hämoleukozyten sollen später aus „Myeloblasten“ hervorgehen, die außerhalb der Blutgefäße zuerst in der Leber und dann in jungem Knochenmark liegen. Erythrozyten und Hämoleukozyten sollen aus dem Blutgefäßsystem entstehen, myeloischer[94] Abkunft sein. Dagegen sollen die Lymphozyten, die beim Erwachsenen durch Mitose größerer, vorzugsweise in den Keimzentren der Lymphknötchen (S. 184) gelegener Zellen der „Lymphoblasten“ gebildet werden, aus dem Lymphgefäßsystem entstehen, lymphatischer Abkunft sein.
Die andern, Verfechter der monophyletischen Abstammung der Blutzellen glauben, daß — abgesehen von den Gefäßwandzellen — nur ein Teil der Zellen zu hämoglobinhaltigen primären Erythroblasten werde; der andere Teil soll farblos bleiben und die Mutterzelle aller weiteren Blutzellen darstellen, und zwar sowohl der sekundären Erythroblasten als auch sämtlicher Arten der gekörnten wie ungekörnten weißen Blutzellen. Die gleiche Fähigkeit soll auch den Wanderzellen (S. 93) zukommen, die zur selben Zeit sich aus fixen Mesenchymzellen außer- wie innerhalb der Blutgefäße entwickeln. Indifferente Zellen sollen zu allen Zeiten des Lebens sich nach dieser oder jener Richtung differenzieren können, wobei jedoch die Bildung der sekundären Erythroblasten sich auf das Knochenmark beschränkt. — Die vielfachen Differenzen in dieser Frage sind zum Teil bedingt durch eine verwirrende Nomenklatur und durch die Einmischung Unberufener.
Die Bestimmung der Mengenverhältnisse sowie des Zahlenverhältnisses zwischen farblosen und farbigen Blutzellen unterliegt bedeutenden Schwierigkeiten, die Angaben können deshalb keine großen Ansprüche auf Sicherheit erheben. Beim Menschen sind in einem Kubikmillimeter Blut etwa 5 Millionen farbige und 5-6 (nach andern 10) Tausend farblose Blutzellen enthalten.
Die Blutplättchen sind sehr vergängliche, farblose, runde, ovale oder zugespitzte Körper von 2-4 µ Durchmesser (Fig. 98), amöboider Bewegung fähig. Sie enthalten einen Körper, dessen Kernnatur höchst fraglich ist. Zuweilen sind sie in großer Anzahl im Blute vorhanden. Ihre Herkunft ist dunkel; die von der einen Seite behauptete Abschnürung von Erythro- oder Leukozyten wird von anderer Seite bestritten (möglicherweise stammen sie von beiden oder aus Knochenmarksriesenzellen; s. S. 218), ebenso ist noch unentschieden, ob die Rolle, welche sie bei der Gerinnung spielen, eine direkte oder nur eine vermittelnde ist.
Bei den Zählmethoden bleiben die Blutplättchen leicht an den Wänden der Mischgefäße kleben; daher kommen wohl die stark differierenden Zahlenangaben (245000-962000 Blutplättchen in einem Kubikmillimeter Menschenblut).
Im Froschblut finden sich ungefärbte, platte, ovale oder zugespitzte kernhaltige Elemente („Thrombozyten“), die kleiner sind wie die Erythroblasten und mit den Blutplättchen der Säuger verglichen worden sind.
Als Elementarkörnchen bezeichnet man Gebilde, die größtenteils Fettpartikelchen sind, welche durch den Chylus ins Blut übergeführt wurden. Sie lassen sich bei saugenden Tieren und bei Pflanzenfressern leicht nachweisen; im übrigen fehlen sie dem vom gesunden Menschen entnommenen Blute. Kleine lichtbrechende Körnchen nicht fettiger Natur, die in wechselnder Menge in jedem Menschenblute vorkommen, hat man Hämatokonien (Blutstäubchen) genannt.
b) Das Blutgefäßsystem.
Das Blutgefäßsystem hat die Aufgabe, dem zirkulierenden Blute als Bahn zu dienen, dabei aber in allen Geweben und Organen die Möglichkeit des Stoffaustausches sicherzustellen. Hieraus ergibt es sich von selbst, daß die sogenannten Kapillaren den funktionell wichtigsten Abschnitt des Systems darstellen. Hier spielt sich durch die extrem dünne Wandung der Gefäße der Stoffaustausch zwischen Blut einerseits, der Gewebeflüssigkeit andererseits ab; daher ist es auch verständlich, daß alle Teile des Gefäßsystems, einschließlich des Herzens, während ihrer Entwicklung einmal einen Zustand darbieten, der im Bau mit demjenigen der Kapillaren des ausgebildeten Körpers im wesentlichen übereinstimmt. Erst mit der während der Entwicklung entstehenden Vergrößerung der Entfernungen zwischen den einzelnen Versorgungsgebieten bilden sich an einem Teil der Gefäße, die dann zu den sogenannten Hauptbahnen (Arterien, Venen) werden, besondere Einrichtungen aus, die der Notwendigkeit entspringen, den Kreislauf des Blutes in Gang zu halten. Eine ganz besonders ausgeprägte Anpassung an diese Aufgabe ist in der allmählichen Komplizierung des Herzens zu erkennen.
Alle Blut- (und Lymph-)gefäße sind an ihrer inneren Oberfläche von einer glatten Epithelschichte überkleidet; diese ermöglicht eine reibungslose Strömung der Flüssigkeit und verhindert die Gerinnung.
Sobald durch Erkrankung einer Gefäßwand eine rauhe Stelle entsteht, besteht die Gefahr einer örtlichen Gerinnung (Thrombose).
1. Die Systeme der Blutkapillaren.
Die Wandung der Kapillaren besteht aus einer ganz dünnen Zytoplasmaschichte, in der in regelmäßigen Abständen stark abgeflachte, länglich geformte Zellkerne eingelagert sind. Durch Methoden, die Zellgrenzen darstellen, lassen sich auch in der Kapillarwand Liniensysteme erzeugen, die längliche Felder um jeden Zellkern abgrenzen. Die Gestalt dieser Felder läßt sich am besten mit einer an jedem Ende zugespitzten Stahlfeder vergleichen. Auch hier sind aber zwischen den so abgegrenzten Kapillarepithelzellen (sogenannte Endothelzellen) feine zytoplasmatische Verbindungsbrücken nachgewiesen, was also beweist, daß dieses Epithel seinen plasmodialen Zusammenhang bewahrt hat.
Der plasmodiale Zusammenhang der Epithelzellen in den Gefäßwänden ist deutlicher in den Kapillarwänden der Leber, der Choriokapillaris des Auges und der Nierenglomeruli ausgesprochen, an welchen Stellen keine Zellgrenzen nachgewiesen werden konnten. Das Kapillarensystem der Leber und der Nierenglomeruli dient nicht nur der allgemeinen Aufgabe der Kapillaren, die Gewebe mit Stoffen zu versorgen, sondern liegt hier an den hauptsächlichen Exkretionsorten des Körpers; möglicherweise steht die Besonderheit, die in dieser, seiner Zusammensetzung nachgewiesen wurde, mit der oben beschriebenen Sonderaufgabe im Zusammenhang; wir wissen darüber nichts Sicheres.
Deutliche Lücken („Stomata“) zwischen den einzelnen kernhaltigen Teilen der plasmodialen Epithelschichte der Gefäßwand bestehen in den gewöhnlichen Kapillaren nicht; wandern Zellen durch die Kapillarwand aus dem Blute in das Gewebe und umgekehrt, so durchbrechen sie die zytoplasmatische Lage vorübergehend; solche Lücken schließen sich aber unmittelbar nach dem Durchtritt der Zellen. An manchen Stellen jedoch, besonders in der Milz, werden größere Lücken in der Gefäßwand ständig beobachtet, wobei dann der plasmodiale Zusammenhang der Gefäßepithelzellen besonders deutlich zum Ausdruck kommt. Hier ist eben für einen regen Durchtritt von Zellen in beiden Richtungen dauernd gesorgt. (Näheres siehe bei Milz, S. 189).
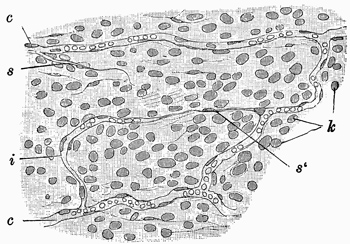
Fig. 102.
Flächenbild eines Stückchens des Omentum majus eines 7 Tage alten Kaninchens. 240mal vergrößert. c Blutkapillaren, teilweise noch Blutkörperchen enthaltend, s Sprosse einer Kapillare in eine freie, solide Spitze auslaufend, i junge Kapillare, schon größtenteils hohl, bei s' noch solid, k Kerne des Bauchfellepithels. Technik Nr. 70, S. 197.
Überall liegen die Kapillaren in lockerem Bindegewebe, dessen Gefüge unmittelbar mit der Kapillarwand in Verbindung steht.
Diese Tatsache erklärt sich aus der Entwicklung der Gefäße, die ebenso wie alle Stützgewebe aus dem embryonalen Plasmodium hervorgehen. Über die Einzelheiten dieses Vorganges sind die Meinungen noch sehr geteilt. Wir schließen uns der Meinung derjenigen an, die den Hohlraum der Gefäße als einen besonders geformten Teil der flüssig bleibenden Interzellularsubstanz betrachten. Die ihn begrenzenden Teile des Schwammes rücken zusammen und formieren unter Beseitigung der interzellularen Lücken die erste Gefäßwand.
Ein Teil der Forscher will die erste Entstehung von Blutgefäßen auf engbegrenzte Bezirke der Embryonalanlage beschränken, und glaubt, daß die übrigen Gewebe durch Einwandern von Gefäßen aus den Gefäßbildungszonen vaskularisiert werden. Die Mehrzahl der Autoren hält aber die lokale Entstehung der ersten Gefäße in allen Teilen des Körpers für erwiesen.
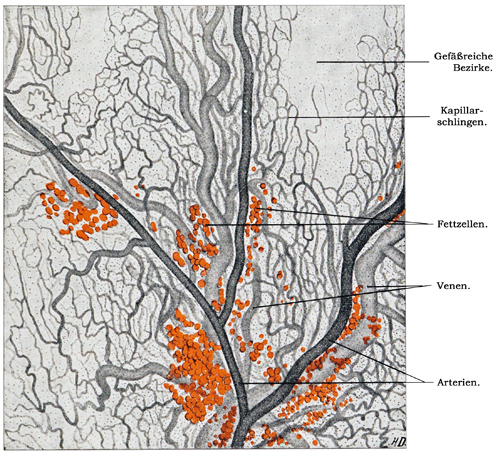
Fig. 103.
Gefäßverzweigung im Omentum maius eines Kaninchens; Zusammenhang der Kapillaren mit Arterien und Venen. 30mal vergrößert. Technik Nr. 71, S. 198.
Im postembryonalen Leben vollzieht sich allerdings, soviel wir wissen, die Entwicklung neuer Kapillaren stets im Zusammenhange mit schon vorhandenen Kapillaren. Von der Wand einer schon fertigen Kapillare erhebt sich eine konische Zytoplasmamasse, die mit breiter Basis der Kapillare aufsitzt und mit fein zulaufender Spitze frei endigt. Solche noch blind endende Kapillarsprossen können schon frühzeitig hohl werden; Blutzellen, die dahineingeraten, gehen zugrunde, weil sie von der Zirkulation und vom Gaswechsel ausgeschlossen sind, und zerfallen in kleine Fragmente, welche irrtümlicherweise als Hämatoblasten erklärt worden sind. Sie haben mit den wahren Erythroblasten (S. 160) nichts zu tun. Im weiteren Verlaufe der Entwicklung vereinigt sich diese Spitze mit einem anderen, ihr entgegenkommenden Ausläufer, der auf gleiche Weise an einer anderen Stelle der Kapillarwand entstanden ist. Diese anfangs solide Bildung wird von der Kapillarwand aus hohl und die Wände des so entstandenen Rohres differenzieren sich zu Epithel- (Endothel-)zellen.
In neuer Zeit mehren sich allerdings die Stimmen, die auch, besonders bei Vorgängen entzündlicher Wundheilung, Kapillaren frei aus dem Bildungsgewebe (plasmodialen Charakters) entstehen lassen wollen.
An vielen Stellen ist nachgewiesen, daß die Kapillaren einmal enger ein andermal weiter sind (die engsten Kapillaren lassen gerade noch ein Blutkörperchen durch). Man hat die Kapillarwandung daher als kontraktil bezeichnet; das würde auch erklären, daß alle Kapillaren unter dem Einflusse des Nervensystems stehen. Überall werden die Kapillaren von marklosen Nervenfasern umsponnen.
Ob die neuerdings aufgestellte Behauptung, daß auch die Kapillaren noch von einzelnen verästelten Muskelfasern umfaßt werden, richtig ist, muß weiteren Untersuchungen vorbehalten werden.
Außerdem ist die dünne Kapillarwand aber sicher einer passiven Dehnung fähig, wenn die Blutzufuhr vermehrt wird. Die Blutzufuhr regelt sich je nach dem Stoffverbrauch in den verschiedenen Geweben und Organen. Besonders auch unter dem Einfluß von lokalen Reizzuständen (Entzündung) sehen wir die Blutfülle und damit die Weite der Kapillaren mächtig zunehmen.
Die Anordnung der Kapillaren richtet sich ganz nach dem durchschnittlichen Stoffwechselbedürfnis der Körperregionen. Die Kapillaren teilen sich ohne Kaliberverminderung und bilden durch Anastomosen mit Nachbarkapillaren Netze (Fig. 103), deren Maschenweite sehr wechselnd ist. Die engmaschigsten Netze finden sich in sezernierenden und resorbierenden Organen (z. B. Leber, Darm, Lunge); weitmaschige Netze kommen vor z. B. in Muskeln, serösen Häuten, in den Sinnesorganen. Umgekehrt verhält sich das Kaliber des Kapillarlumens; die weitesten Kapillaren finden sich in der Leber, die engsten in der Retina und in den Muskeln.
Alle Kapillarsysteme des menschlichen Körpers sind zwischen größere Gefäßbahnen geschaltet, deren eine das Blut in das Kapillarsystem hineinleitet, während eine andere in gleichem Maße Blut abfließen läßt (s. Fig. 103). Zuführende Bahnen sind in den meisten Fällen Arterien, in wenigen Fällen Venen; letztere sind in der Regel Bahnen, in denen das Blut aus dem Kapillarsystem zum Herzen hinfließt.
Arterien führen das Blut vom Herzen fort, Venen in das Herz hinein. Die wichtigsten Abweichungen von dem allgemeinen Verhalten der Kapillarsysteme zu Arterien und Venen finden sich 1. in der Leber, deren Kapillaren zum größeren Teil von der Pfortader, zum kleineren von der Leberarterie gespeist werden, und 2. in der Niere, wo zwei Kapillarsysteme hintereinander geschaltet sind, die durch eine kleine Arterie miteinander verbunden werden (arterielle Wundernetze, s. unter Niere).
Das Glomus caroticum („Karotisdrüse“) besteht im wesentlichen aus Blutgefäßen. Die engmaschigen Kapillaren sind sehr ungleich weit und von zahlreichen chromaffinen (siehe sympath. Ganglien) Zellen umgeben, außerdem enthält das Glomus fibrillares Bindegewebe, einzelne Ganglienzellen und ansehnliche Mengen markhaltiger und markloser Nervenfasern. Das Glomus coccygeum („Steißdrüse“) ist eine arterio-venöse Anastomose; seine Kapillaren sind von einer mehrfachen Schicht epithelähnlicher Zellen umgeben. Der Sympathikus ist am Aufbau der Steißdrüse nicht beteiligt. Chromaffine Zellen fehlen. Die Bedeutung beider Gebilde ist unbekannt.
2. Die Arterien.
Die Gefäßbahn, die das Herz mit den Kapillarsystemen verbindet, steht in ihren einzelnen Teilen unter ganz verschiedener, funktioneller Beanspruchung. Die Anfangsteile des Arteriensystems werden von dem durch die Herzkontraktion in rasche Bewegung versetzten Blute durchströmt; sie brauchen deshalb dem Blute keinen neuen Impuls zu geben. Mit der Zunahme der Entfernung vom Herzen verlangsamt sich die Blutbewegung immer mehr infolge des Widerstandes, der durch die zunehmende Verengerung des sich immer mehr verzweigenden Gefäßsystems entsteht. Die sogenannten mittleren Arterien besitzen deshalb, in peripherer Richtung zunehmend, Muskeln, so daß sie durch Kontraktionen die Blutgeschwindigkeit aktiv regulieren können.
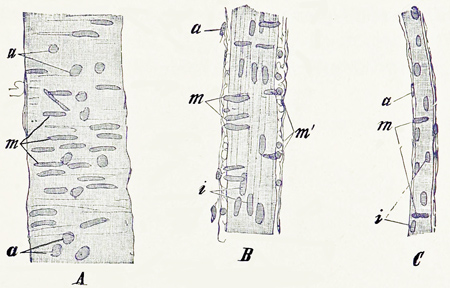
Fig. 104.
Stücke kleiner Arterien des Menschen. 240mal vergrößert. i Kerne der T. intima, die Konturen der Zellen selbst sind nicht zu sehen. m T. media, an den quergestellten Kernen der glatten Muskelfasern kenntlich; a Kerne der T. externa. A Arterie. Einstellung auf die Oberfläche. B Arterie, Einstellung auf das Lumen. Man sieht bei m' die Muskulariskerne von dem einen Pole her, im optischen Querschnitte. C Kleine Arterie kurz vor dem Übergange in Kapillaren: die T. media besteht hier nur aus vereinzelten Muskelzellen. Technik Nr. 72, S. 198.
Die Widerstandsfähigkeit der Wandung muß umgekehrt in der Nähe des Herzens am bedeutendsten sein, weil hier stoßweise ein intensiver Druck auf die Innenwand der großen Gefäße ausgeübt wird. Die Wand der sogenannten großen Arterien ist deshalb vorzugsweise aus Stützgewebe zusammengesetzt, in dem die elastischen Substanzen vorherrschen; hierdurch wird die pulsatorische Blutbewegung auch einheitlicher gestaltet; die Herzkontraktion stößt das Blut in die Anfangsteile des Arteriensystems, dessen elastische Wände dadurch ausgedehnt werden; die langsame Wirkung der elastischen Kraft treibt dann das Blut in gleichmäßigem Strome in die mittleren Arterien weiter.
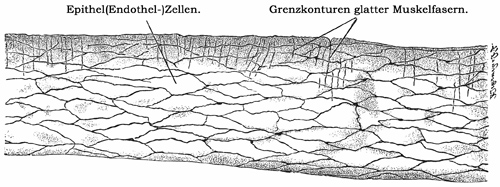
Fig. 105.
Gefäßepithel (-endothel) einer Mesenterialarterie eines Kaninchens. Flächenbild, die Kerne sind hier nicht zu sehen. 250mal vergrößert. Technik Nr. 73, S. 198.
Aus diesen verschiedenen Aufgaben erklärt sich der Bau der Arterienwandung. Bei allen Arterien wird die Epithelschichte durch außen anschließende Schichten ergänzt, deren Grundlage Stützgewebe ist, in dem die verschieden starke Ausbildung von Differenzierungsprodukten die Leistungsfähigkeit und das Aussehen der Wandung ebenso bestimmen, wie die wechselnde Anteilnahme von glatter Muskulatur.
Für alle kleinen[95] und mittleren[95] Arterien ist die Ausstattung mit glatten Muskeln, die stets quer zur Längsachse des Gefäßrohres angeordnet sind, das hervorstechendste Merkmal (Fig. 104), in den großen Arterien spielt die Muskulatur gegenüber dem elastischen Bindegewebe eine viel geringere Rolle.
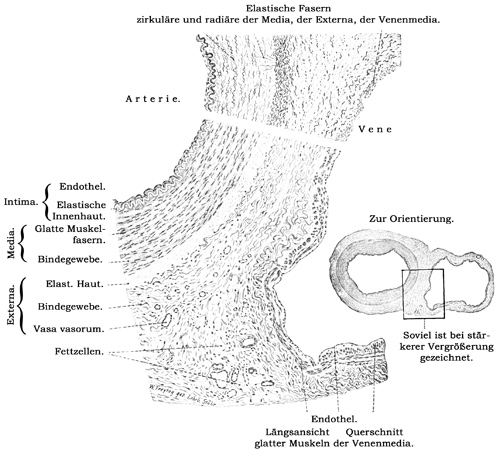
Fig. 106.
Stücke zweier Querschnitte durch die gleiche Arterie und Vena ulnaris des Menschen. 50mal vergr. Der obere Querschnitt zeigt Färbung der elastischen Fasern nach Technik C, S. 35. Der untere Querschnitt ist nach Technik 18, S. 42 behandelt. Die Media der Vene zeigt nur links unten eine regelmäßige dünne Ringmuskulatur; aber sowohl oben wie rechts ist die Muskulatur in Ring- und Längslage geteilt.
Für die Beziehungen der glatten Muskelzellen zum Bindegewebe der Gefäßwand gilt das allgemein hierfür Gesagte (s. S. 121).
Durch die Bildung einer Ringmuskelschichte ergibt sich eine natürliche Einteilung der Arterienwandung in drei Schichten, deren mittlere (Tunica media) eben die Ringmuskelschichte ist. Die nach innen von dieser liegende Schichte (T. intima) besitzt als deutlichstes Merkmal das bei den Kapillaren schon besprochene Epithel (Endothel) (Fig. 105); mit der Größenzunahme der Gefäßwand grenzt sich aber zwischen Epithel und Muskelschichte eine deutliche Lage ab, die aus einem eigenartig differenzierten Stützgewebe besteht, das nach der Media zu eine starke elastische Membran (T. elastica interna) bildet. Die Intima, die in sich noch Netze feiner elastischer Fasern sowie abgeplattete Zellen einschließt, legt sich bei der Kontraktion der Gefäßwand in Längsfalten, woraus sich die Schlängelung der T. elastica interna und des Epithels auf Arterienquerschnitten leicht erklären läßt (Fig. 106, 107).
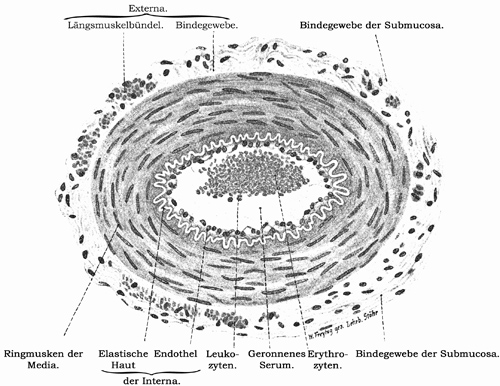
Fig. 107.
Querschnitt einer Arterie der Submucosa des menschlichen Magens mit vereinzelten Bündeln von Längsmuskeln in der Externa. 240mal vergrößert. Technik wie Nr. 110, S. 289. Diese Methode läßt nichts von den elastischen Fasern und von dem zwischen den Muskelfasern der Media befindlichen Bindegewebe sehen.
Der Dickenschwankung des Arterienrohres paßt sich das peripher von der Muskelschichte liegende Bindegewebe an; kollagene wie elastische Fasern verlaufen hier zumeist in der Längsrichtung des Gefäßrohres. In vielen Fällen liegen in dem Bindegewebe dieser Tunica externa auch Muskelzellen, die in ihrem Verlaufe ebenfalls die Längsrichtung bevorzugen. Die T. externa (auch Adventitia genannt) geht ohne scharfe Grenze in das die Arterien tragende Bindegewebe über.
Man hat die Gefäßerweiterung auf eine Kontraktion der Längsmuskeln in der T. externa, die Gefäßverengerung auf eine Kontraktion der Ringmuskulatur zurückführen wollen. Das kann aber nicht für alle Fälle zutreffen, weil Längsmuskeln nicht allen Arterien zukommen.
An der inneren Grenze der Media kommen auch längsverlaufende Muskelbündel vor; sie sind besonders in der A. subclavia stärker entwickelt.
Bei den größeren unter den sogenannten mittleren Arterien nimmt das Stützgewebe auch in der T. media einen immer größeren Raum ein, wobei vor allem elastische Fasernetze und Membranen zwischen die Muskelschichten abgelagert werden. Der Anteil beider Gewebe ist in den einzelnen Arterien sehr verschieden.
So überwiegt in der A. coeliaca, femoralis und radialis das Muskelgewebe, in der Carotis, Axillaris und Iliaca communis das elastische Stützgewebe.
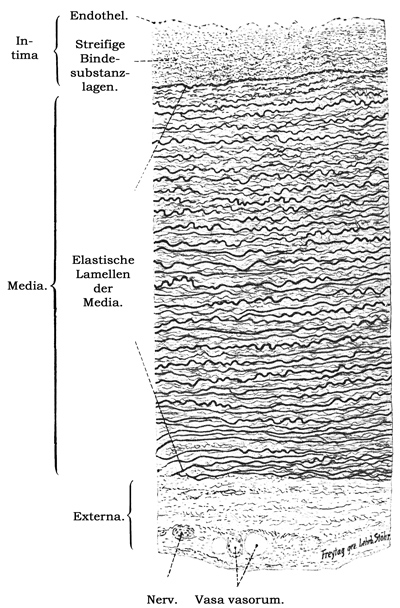
Fig. 108.
Stück eines Querschnittes der Brustaorta des Menschen. 80mal vergrößert. Die Kerne der glatten Muskelfasern sind hier nicht zu sehen. Technik Nr. 74, S. 198.
Die T. externa ist ebenfalls dicker geworden. Stärkere elastische Fasern befinden sich in besonders reichlicher Menge an der äußeren Grenze der T. media und bilden an dieser Stelle bei vielen Arterien eine eigene Lage, die als elastische Haut der Externa (T. elastica externa) (Fig. 106) beschrieben worden ist.
Bei den Hirnarterien sind die elastischen Längsfasern der Adventitia sehr gering entwickelt.
Bei den großen Arterien (Aorta, Pulmonalis) zeigt die Intima kürzere, mehr der polygonalen Form sich nähernde Epithel- (Endothel-) Zellen: dicht darunter liegen die schon bei den mittelstarken Arterien vorkommenden, streifigen Bindesubstanzlagen, die auch hier abgeplattete, sternförmige oder rundliche Zellen sowie elastische Fasernetze einschließen. Diese Fasernetze sind um so dichter, je näher sie der T. media liegen und gehen endlich in eine gefensterte Membran über, welche der gefensterten, elastischen Innenhaut kleinerer und mitteldicker Arterien entspricht. Die T. media der großen Arterien ist durch reich entwickelte, die muskulösen Elemente an Menge übertreffende, elastische Elemente charakterisiert. An Stelle dünner Fasernetze finden sich hier entweder dichte Netze starker elastischer Fasern oder gefensterte Häute, welche regelmäßig mit Schichten glatter Muskelfasern abwechseln.
Die elastischen Häute finden sich schon bei den größeren mitteldicken Arterien; besonders gut sind sie bei den Karotiden ausgeprägt, die bezüglich ihres Baues den großen Arterien am nächsten stehen.
Die elastischen Elemente haben wie die Muskelfasern einen zirkulären Verlauf; schräg die Muskelschichten durchsetzende Fasern und Häute stellen eine Verbindung aller elastischen Elemente der T. media dar. Die Externa großer Arterien zeigt keine wesentlichen Eigentümlichkeiten, sie unterscheidet sich nur wenig von derjenigen mittelstarker Arterien. Eine elastische Haut der Externa fehlt. Glatte Muskelfasern kommen an großen Arterien nur in der Externa von Tieren vor.
Die hier getroffene Einteilung der Schichten der Arterienwand entspricht dem bisherigen Gebrauche. Ein neuerer Vorschlag geht dahin, als Intima einzig allein das Epithel-(Endothel-)rohr zu betrachten, als Externa alles nach außen von der Elastica externa, die selbst zur Media zu rechnen ist. Zwischen beiden liegt die Media, deren Grenzlamellen Elastica externa und interna darstellen. Die „streifigen Lagen“ größerer Arterien sind zur Media zu rechnen.
3. Die Venen.
Die Wandung der Venen zeigt in ihrem Aufbau vielleicht noch größere Schwankungen wie diejenige der Arterien. Die Anforderungen an ihre Leistungen sind ganz andere: nicht der Widerstand, der durch die Gefäßverzweigung gegeben ist, muß durch die Tätigkeit der Venenwand überwunden werden, es handelt sich vielmehr darum, die unter ganz geringem Druck stehende Blutmenge dem großen Sammelbecken Herz zuzuführen. Infolgedessen sehen wir die kräftigste Wandung bei denjenigen Venen ausgebildet, die, wie diejenigen der unteren Körperhälfte, eine besonders große Arbeit zu verrichten haben, während die Venen der oberen Körperhälfte, aus denen bei der aufrechten Haltung des Menschen das Blut leichter zum Herzen fließen wird, die Wandung sehr viel dünner ist. Zur Unterstützung der Venenarbeit dienen die Klappen.
Entsprechend dem vorher gesagten ist es zwecklos, bei den Venen eine ähnliche Größeneinteilung vorzunehmen, wie bei den Arterien.
Die Extremitätenvenen lassen noch am ehesten die Dreischichtung der Wandung erkennen, wie sie bei Arterien besteht. Auch hier besitzt die Media eine zum Teil kräftig entwickelte Ringmuskulatur. Diese ist aber niemals in so kompakten Lagen angeordnet wie in den Arterien, sondern von ausgedehnten Bindegewebslagen durchsetzt, in dem elastische Netze deutlich hervortreten.
Die elastische Substanz tritt in der Venenwandung nicht in der Form von gefensterten Membranen, sondern stets in Form von, wenn auch sehr dichten, Fasernetzen auf.
Bei stärkerer Muskelausbildung kommt es viel mehr als bei Arterien zur Entfaltung von Längsmuskelzügen; hierdurch wird eine kräftige Verkürzung der Wandung großer Venen möglich, was im Verein mit der Klappenausbildung das Heben der Blutsäule bewirkt. Längsmuskelzüge finden sich am häufigsten in der T. externa (Fig. 109), die dadurch, besonders in den Venen der Bauchhöhle, zum umfänglichsten Teile der Wandung wird. Längsmuskelzüge in der Intima ermöglichen einen wulstartigen Verschluß des Gefäßes, was bei der V. dorsalis penis die Erektion erleichtert, die in einer intensiven Blutfüllung des Gliedes besteht.
Solche Längsmuskelzüge finden sich auch in der Intima der V. iliaca, femoralis, saphena und den Darmvenen, im intramuskulären Teil der V. uterina; die genannten Venen sind somit am vollständigsten mit Muskulatur ausgestattet.
Im Gegensatz dazu stehen die Venen des Kopfes und Halses, deren dünner Wandung die Muskulatur fast vollständig fehlt. Ganz besonders gilt das von den Gehirn- und Schädelvenen und den großen Stämmen des Gebietes der V. cava superior.
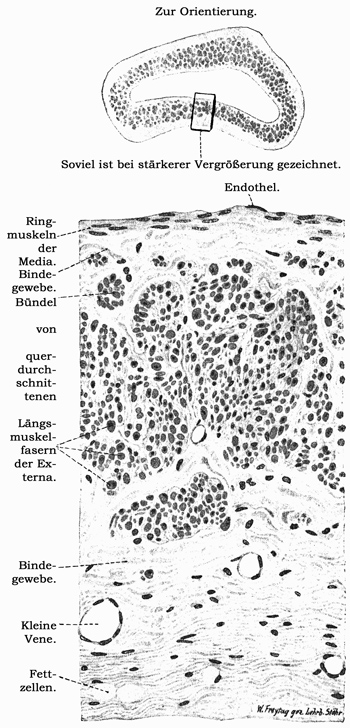
Fig. 109.
Stück eines Querschnittes einer menschlichen Vena suprarenalis 240mal vergr. Technik Nr. 75, S. 199. Die elastischen Elemente sind bei dieser Methode nicht zu sehen.
Als Venenklappen bezeichnen wir Falten der Intima, die meist zu zweit in gleicher Höhe unterhalb der Einmündung eines Gefäßastes von der Wand in das Innere vorgeschlagen werden können, und dann unter der Last der Blutsäule einen vollständigen Abschluß in distaler Richtung ermöglichen.
Die Klappen werden von Epithel-(Endothel-)zellen überzogen, die an der dem Blutstrom zugekehrten Seite längsgestellt, an der der Venenwand zugekehrten Seite quergestellt sind; unter den längsgestellten Zellen liegt ein dichtes elastisches Netzwerk, unter den quergestellten Zellen ein feinfaseriges Bindegewebe.
4. Das Herz.
Das Herz ist funktionell und nach seiner Zusammensetzung ein Bestandteil des Zirkulationssystems; wie das Kapillarsystem der Hauptort der Stoffwechselfunktion, so ist das Herz der Hauptort für den motorischen Antrieb der Blutflüssigkeit. So sehen wir in seiner Wandung die Muskulatur bei weitem den größten Raum einnehmen. Ihre Anordnung und charakteristische Sonderung bewirkt wie bei den Arterien eine deutliche Dreischichtung der Wandung in 1. T. intima — Endokardium, 2. T. media — Myokardium und 3. T. externa — Epikardium (= viszerales Blatt des Perikardiums). Die Umschließung des Herzens von einer serösen Höhle (Perikardialhöhle) kommt in dem äußeren Abschluß des Epikardiums durch ein einschichtiges Plattenepithel zum Ausdruck.
1. Das Endokardium ist an seiner der Herzhöhle zugewendeten freien Oberfläche mit einer einfachen Lage platter, unregelmäßig polygonaler Epithel-(Endothel-)zellen (s. S. 75) überzogen (Fig. 110), darunter liegt eine bindegewebige Haut, welche glatte Muskelfasern und zahlreiche elastische Fasern enthält.
Die glatten Muskelfasern sind da häufiger, wo die Herzwand glatt ist, am stärksten aber vor der Ursprungsstelle der Aorta entwickelt. Die elastischen Fasern sind in den Vorhöfen viel stärker entwickelt als in den Kammern und bilden dort entweder dichte Fasernetze oder sind selbst zu gefensterten Häuten (Fig. 44, S. 97) verschmolzen.
2. Das Myokardium besteht aus einem gestreckten Netz von Muskelfasern (deren Bau s. S. 122) und einem diese umgebenden feinen Perimysium; der Verlauf der Muskelzüge ist ein sehr verwickelter. Die Muskulatur der Vorkammern ist von jener der Kammern nicht vollkommen getrennt. Vom Septum atriorum, links neben der Mündung des Sinus coronarius, entspringt unter Bildung eines Knotens („Atrioventrikularknoten“) ein ca. 2,5 mm breites Muskelbündel (Tawara), dessen Fasern sich von jenen des gewöhnlichen Myokards unterscheiden durch größere Dicke und durch spärlichere, in reichlicherem Sarkoplasma eingebettete Fibrillen (Fig. 110). Das Bündel zieht über den Ursprung des hinteren Trikuspidalzipfels an der Pars membranacea septi vorbei nach dem Septum ventriculorum und endet ausstrahlend in den subendokardialen Schichten beider Ventrikel. Die Verästelungen dieses Bündels verbinden sich mit den gewöhnlichen Muskelfasern sowohl der Vorkammern wie der Kammern, so daß ein zusammenhängendes System entsteht, das als „Reizleitungssystem des Herzens“ betrachtet wird.
Die Fasern des ventrikulären Teils sind besonders reich an Glykogen (Methode siehe Leberzellen).
Diese Fasern entsprechen den Purkinjeschen Fäden, die bei den verschiedenen Säugetieren und auch an verschiedenen Stellen ungleich ausgebildet sind. Beim Menschen sind sie den gewöhnlichen Herzmuskelfasern am ähnlichsten, beim Schaf dagegen bestehen die Fäden aus hellen, aneinandergereihten Zellen, deren Randschichten quergestreifte, von Zelle zu Zelle kontinuierlich durchziehende Fibrillen enthalten. Ihre Kerne vermehren sich teils durch Mitose, teils durch Amitose (dann unterbleibt die Zellteilung). Diese Zellen sind als Entwicklungsformen echter Herzmuskelfasern zu betrachten.
Ein zweites kleineres Bündel (der „Sinusknoten“) liegt ventral von der Einmündung der Cava superior in den Vorhof dicht unter dem Epikard. Die Muskelfasern beider Knoten sind sehr fein, diejenigen der Bündel aber breit.
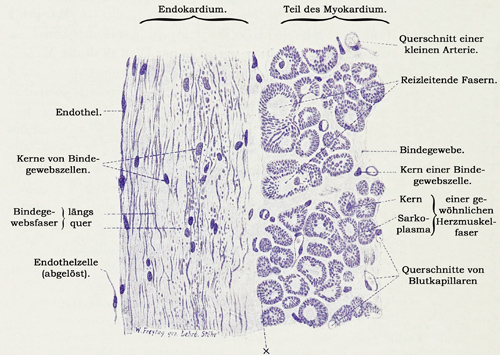
Fig. 110.
Stück eines Querschnittes durch die Musculi pectinati eines menschlichen Herzens. 240mal vergr. Technik Nr. 75, S. 199. Die Fibrillen der querdurchschnittenen Muskelfasern erscheinen als Punkte, die kleinen Striche sind teils schräge Durchschnitte von Fibrillen, teils (bei ×) Fibrillenbündel (S. 128). Die elastischen Fasern sind nicht zu sehen; glatte Muskelfasern fehlen völlig.
An den Vorkammern kann man eine beiden Vorkammern gemeinschaftliche äußere, quere und eine jeder Vorkammer eigentümliche innere, longitudinale (besonders im rechten Vorhofe, mm. pectinati) Lage unterscheiden. Außerdem finden sich viele kleine, in anderen Richtungen verlaufende Muskelbündel. Viel unregelmäßiger ist die Muskulatur der Kammern, deren Bündel in den verschiedensten Richtungen, oft in Form von Achterzügen verlaufen. Das Perimysium enthält im Bereich der Vorkammern viele elastische, im Alter sich vermehrende Fasern, die mit denen des Endo- und des Epikardium zusammenhängen; im Bereich der Kammern enthält das Perimysium, abgesehen von den der Adventitia der Myokardgefäße angehörenden elastischen Fasern, nur wenige elastische Elemente. Zwischen Vorkammern und Kammern liegen derbe, mit elastischen Fasern untermischte Sehnenstreifen, die Annuli fibrosi, von denen der rechte stärker ist als der linke. Ebensolche, jedoch schwächer entwickelte Streifen liegen an den Ostia arteriosa der Kammern: zahlreiche Enden von Muskelfasern inserieren an sämtlichen Streifen.
3. Das Epikardium ist eine bindegewebige, von Fettzellen und elastischen Fasern durchsetzte Haut, welche an der Außenfläche von einem einschichtigen Plattenepithel überzogen ist. Die elastischen Fasern des Vorkammerepikards gehen in die Adventitia der großen Venen über, die des Kammerepikards verlieren sich im Conus arteriosus und gehen nicht in Aorta und Pulmonalis über.
Die Atrioventrikularklappen bestehen aus faserigem Bindegewebe, welches mit dem der Annuli fibrosi zusammenhängt, und sind an ihren Flächen vom Endokard überzogen. Sie enthalten ferner Muskelfasern (nur in den Ursprungsrändern) und elastische Fasern, welche sich auch in die Chordae tendineae fortsetzen. An den freien Rändern (an den Noduli) der ähnlich gebauten Semilunarklappen sind elastische Fasern reichlich vorhanden; Muskelfasern fehlen hier.
Der Herzbeutel, Perikardium, besteht aus derbem, mit elastischen Fasern durchmischten Bindegewebe, welches an seiner inneren dem Herzen zugekehrten Oberfläche von einem einfachen Plattenepithel überkleidet ist.
Blut-, Lymphgefäße und Nerven verhalten sich wie am Bauchfell (siehe dort).
5. Ernährungseinrichtungen und Nervenversorgung.
Das Epithel, das das ganze Zirkulationssystem auskleidet, dürfte sein Stoffwechselbedürfnis größtenteils aus dem das Lumen durcheilenden Blute selbst decken; so finden wir in Kapillaren und kleinsten Arterien und Venen keine besonderen Ernährungsbahnen zur Versorgung der Wandung. Nur zum Abfluß der Gewebeflüssigkeit nehmen aus dem lockeren, die Gefäße umgebenden Bindegewebe Lymphbahnen ihren Anfang. Man spricht geradezu von adventitiellen Lymphräumen, womit die Tatsache gemeint ist, daß sich in der T. externa besonders bei entzündlichen Prozessen zahlreiche freie Zellen ansammeln können.
Besonders die großen Gefäße und das Herz sind reich an Lymphbahnen.
Die Wandung aller mittleren und großen Blutgefäße wird vom Bindegewebe aus ernährt, durch Vermittlung besonderer kleiner Blutgefäße, Vasa vasorum, die fast ausschließlich in der T. externa verlaufen. Die T. intima ist auch bei diesen Gefäßen frei von besonderen Ernährungsbahnen.
Die zahlreichen Blutgefäße des Herzens verlaufen in der Muskulatur nach der für Muskeln typischen Anordnung (siehe „Organe des Muskelsystems“). Auch Epikard und Endokard (letzteres nur in seinen tieferen Schichten) besitzen Blutgefäße. Die Semilunarklappen enthalten keine Blutgefäße, die Atrioventrikularklappen nur an ihrer Basis, soweit Muskulatur in sie hineinreicht. Die Herzarterien sind keine Endarterien (s. „Blutgefäße des Magens“).
Der Regulierung des Kreislaufes dient eine reichliche Nervenversorgung des ganzen Gefäßsystems. In der T. externa aller Gefäße finden sich Geflechte markhaltiger und markloser Nerven, zum Teil in komplizierter Anordnung. In kleineren Gefäßen stehen diese Nervennetze mit ähnlichen in Verbindung, die in tieferen Lagen der Wandung vorkommen. Von beiden Netzen aus werden Muskelfasern versorgt, außerdem wahrscheinlich auch sensible Endigungsäste abgegeben. In größeren Gefäßen kommt noch ein drittes, an der Grenze von Externa und Media gelegenes Geflecht hinzu.
Ganglienzellen, vereinzelt und in Gruppen, sind bisher nur in den großen Gefäßen im Innern der Körperhöhlen und der Schädelhöhle, in der Externa gelagert, nachgewiesen worden. Man nimmt an, daß die zu den Gefäßnerven zugehörigen Ganglienzellen zum größten Teile in den Ganglien des Grenzstranges liegen, von denen aus die Gefäßnerven der in den Körperhöhlen liegenden Gefäße direkt, diejenigen für die Rumpf- und Extremitätengefäße in der Bahn der Körpernerven an ihr Ziel gelangen.
Es ist bisher noch nicht gelungen, gefäßerweiternde und -verengende Nerven morphologisch zu unterscheiden. Ebensowenig kann die Kenntnis von besonderen sensiblen Nerven der Gefäße als gesichert gelten, wenngleich in der Externa der Bauchaorta Lamellenkörperchen (s. Kap. „Periphere Nervenendigungen“) nachgewiesen sind.
Besonders reichlich, dem Typus nach aber mit der Innervation der Gefäße übereinstimmend ist die Nervenversorgung des Herzens. Die vielen, dem Vagus und Sympathikus entstammenden, teils marklosen, teils markhaltigen Nerven bilden zahlreiche, Ganglienzellen einschließende Geflechte, die daraus entspringenden Zweige sind teils motorisch (an jeder Muskelfaser endet mit einer kleinen Anschwellung je eine Nervenfaser), teils sensitiv; inwieweit die einzelnen Teile des intrakardialen Nervensystems mit den hemmenden (Vagus-) oder beschleunigenden (Sympathikus-) Herznerven in Verbindung stehen, ist noch durchaus unsicher.
Die Ganglienzellen liegen beim Menschen subepikardial, hauptsächlich in der hinteren horizontalen Kranzfurche bis zum Atrioventrikular- und Sinusknoten.
Physiologische Erfahrungen sprechen dafür, daß das intrakardiale Nervensystem ein relativ selbständiger Regulationsapparat ist, der durch Verbindung mit den von außen herantretenden, obengenannten Nerven in entsprechender Weise beeinflußt werden kann.
c) Das Lymphgefäßsystem.
Das Lymphgefäßsystem ist dem Venensystem parallel geschaltet; die Lymphe sammelt sich aus der Gewebsflüssigkeit und bewegt sich von den Lymphkapillaren aus nur in einer Richtung, wobei eine immer größere Zahl kleiner Gefäßstämme sich zu großen sammelt, die endlich (als D. thoracicus und Tr. bronchomediastinalis dexter) in das Venensystem einmünden.
Die ähnliche, motorische, Aufgabe bewirkt manche Ähnlichkeit im Aufbau der größeren Lymphgefäße mit den Venen (Klappen, Anordnung der Muskulatur). Nur sind wegen der noch geringeren Druckbeanspruchung der Lymphgefäße diese noch zarter gebaut als die Venen.
Ein besonderes Gepräge erhält das Lymphgefäßsystem durch die Einschaltung der Lymphknoten, die, in der Lymphbahn gelegen, die Zusammensetzung der Lymphe sehr stark modifizieren.
Fig. 111.
Längsansicht eines Lymphgefäßes des Mesenterium vom Kaninchen. 50mal vergrößert. Grenzen der Epithel-(Endothel-)zellen. Technik Nr. 73, S. 198.
1. Die Lymphgefäße.
Die ersten Lymphgefäße entwickeln sich durch Sprossung aus dem Venensystem.
Die Frage nach den ersten Anfängen der Lymphgefäße ist noch nicht endgültig entschieden; während die einen Autoren die Lymphkapillaren für allseitig geschlossen halten, sind nach der zweiten Ansicht dieselben peripheriewärts offen, indem sie mit einem im Stützgewebe befindlichen Saftkanalsystem (S. 95) in direkter Verbindung stehen. Nach der ersten Meinung würde der durch die Blutkapillarwand in die Gewebe übergetretene Gewebssaft (Parenchymsaft), soweit er nicht zur Ernährung der Gewebe verbraucht wird, durch Endosmose in die geschlossenen Lymphkapillaren eindringen, nach der zweiten Ansicht dagegen direkt von den Geweben aus durch die offenen Lymphgefäßanfänge seinen Abfluß finden (vgl. Technik Nr. 77, S. 199).
Die Saftkanälchen werden als „Lymphbahnen“ den mit zelligen Wandungen versehenen Lymphgefäßen gegenübergestellt; andere Autoren setzen Lymphbahnen = Lymphgefäßen + Saftkanalsystem.
Die typischen, histologisch darstellbaren Lymphkapillaren sind allseitig geschlossene, durch Epithel (Endothel) ausgekleidete Röhren, die den Blutkapillaren ähnlich, jedoch weiter und an den Teilungsstellen oft bedeutend verbreitert sind. Das von ihnen gebildete Netzwerk ist unregelmäßiger.
In größeren Lymphgefäßen steigert sich die Wanddicke ganz ähnlich wie bei den Venen, so daß die größten Lymphgefäße ebenfalls eine Dreischichtung der Wandung aufweisen.
Die Intima besteht aus Epithel(Endothel-)zellen (Fig. 111) und feinen elastischen Längsfasernetzen. Die Media wird durch querlaufende glatte Muskelfasern und wenige elastische Fasernetze gebildet. Die Externa besteht aus längsverlaufenden Bindegewebsbündeln, elastischen Fasern und gleichfalls längsverlaufenden Bündeln glatter Muskelfasern.
Die Nerven der Lymphgefäße verhalten sich ähnlich denen der Blutgefäße.
2. Die Lymphknoten.
Die Lymphknoten haben, soviel wir wissen, eine doppelte Aufgabe: 1. entnehmen sie der Lymphe eine Reihe von Substanzen, die die Lymphe aus den Geweben mit sich führt und werden dadurch zu wichtigen Schutzorganen des Körpers; 2. führen sie der Lymphe und dadurch indirekt dem Blute Lymphozyten zu, die in den Lymphknoten in großen Mengen produziert werden.
Der ersten Aufgabe werden die Lymphknoten dadurch gerecht, daß die einheitliche Lymphbahn in ihnen zu einem feinporigen Hohlraumsystem umgewandelt ist, das demjenigen eines Schwammes gleicht. Vermöge der dadurch bewirkten Oberflächenentfaltung werden in den die Wandung auskleidenden Epithel-(Endothel-)zellen Mikronen[96] und Ultramikronen gespeichert, wovon die Befunde im menschlichen Organismus zahlreiche Beispiele liefern: Kohlenstaub in den Zellen bronchialer Lymphknoten, Farbspeicherung in den Achsellymphknoten nach Tätowierung der Arme u. a. sind auf den genannten Vorgang zurückzuführen.
Experimentell kann man durch subkutane Injektion suspendierter (Tusche) oder kolloidal gelöster Farbstoffe die Ablagerung derselben in den regionären Lymphknoten leicht verfolgen.
Die Lymphknoten stellen hiernach wichtige Schutzorgane dar, was in der Anteilnahme der Lymphknoten an vielen Erkrankungen (Entzündungen, bösartige Geschwülste u. a.) zum Ausdruck kommt. Diese Erkrankungen können sich nur dann ausbreiten, wenn die „Kampfkraft“ der Lymphknoten Schritt für Schritt überwunden wird.
Die zweite Aufgabe, die Lymphozytenproduktion, teilen die Lymphknoten mit allen anderen sogenannten lymphatischen Organen, zu denen die Noduli lymphatici (s. S. 188), Anteile der sogenannten Blutlymphknoten, die Milz und die Tonsillen zu rechnen sind. Sie alle produzieren nur Lymphozyten, keine Hämoleukozyten; manche Erkrankungen befallen das gesamte System der lymphatischen Organe gemeinsam und stellen dieses dadurch in Gegensatz zu den Produktionsstätten der Hämoleukozyten.
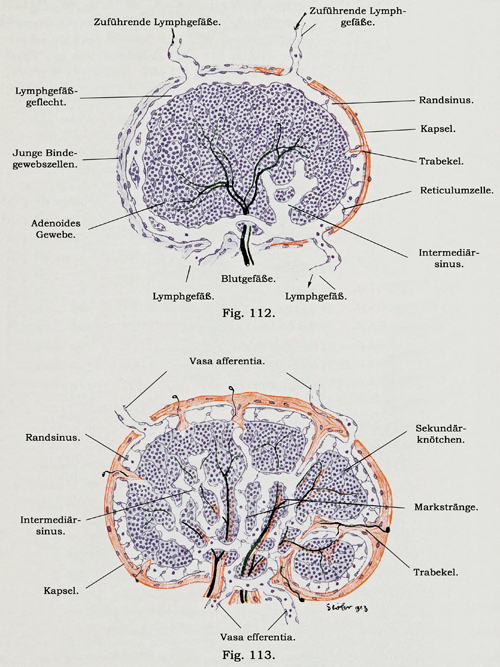
Fig. 112. Fig. 113.
Vier Stadien der Entwicklung der Lymphknoten des Menschen. Schematisch. Erstes Stadium Fig. 113 links, zweites Fig. 112 rechts usw.
Die Lymphknoten (schlechter Lymphoglandulae, Lymphdrüsen vgl. S. 99) sind makroskopisch sichtbare Körper von meist rundlich ovaler oder platter, bohnenförmiger Gestalt und sehr wechselnder Größe. An der einen Seite haben sie meist eine narbige Einziehung, den Hilus, an welchem die abführenden Lymphgefäße (Vasa efferentia) liegen, während die Vasa afferentia an verschiedenen Stellen eintreten.
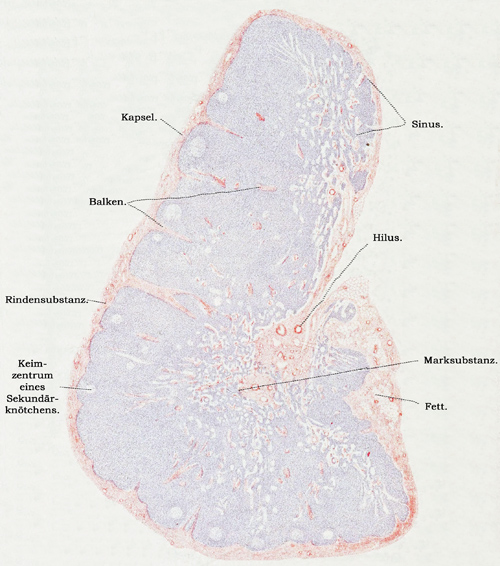
Fig. 114.
Längsschnitt eines Halslymphknotens eines Hingerichteten. 12mal vergrößert. Technik Nr. 78, S. 199.
Ihr Bau wird verständlich durch die Betrachtung ihrer Entwicklung, die in der zweiten Hälfte des Fetallebens erfolgt. Der einzelne Lymphknoten ist anfänglich eine kompakte blutgefäßreiche Masse, die aus retikulärem Gewebe (S. 98) besteht und von einem Geflecht von Lymphgefäßen umsponnen wird. Dieses Geflecht wird durch Vergrößerung und Konfluenz zu einem „Randsinus“, während sich gleichzeitig aus dem umgebenden jungen Bindegewebe eine Kapsel um das Ganze bildet (Fig. 112 rechts). Jetzt dringen am Hilus, der Eintrittsstelle der Blutgefäße zahlreiche, netzförmig verbundene Fortsätze des Randsinus, die „Intermediärsinus“ in die Zellmasse ein (Fig. 112 rechts und weiter vorgeschritten 112 links), die dadurch in der Nähe des Hilus in dünne „Markstränge“, entfernter vom Hilus in kuglige „Sekundärknötchen“ (Follikel) geteilt wird. Schließlich erreichen die Intermediärsinus den Randsinus und öffnen sich in diesen (Fig. 113 rechts). Die ganze kompakte Zellmasse ist damit kanalisiert; die den Randsinus speisenden Lymphgefäße werden zu Vasa afferentia, die am Hilus befindlichen Lymphgefäße werden zu Vasa efferentia. Unterdessen sind von der Kapsel aus Fortsätze „Trabekel“ in den Randsinus (Fig. 112 rechts) und weiter in die Intermediärsinus (Fig. 113) gewachsen. Das alle Sinus auskleidende Epithel soll die Retikulumzellen (S. 98) liefern, die im Lumen der Sinus ausgespannt sind und später Bindegewebsfibrillen entwickeln können.
Es ist fraglich, ob sich das Epithel (Endothel) überall erhält; wenn es (bei der Bildung der Retikulumzellen) verbraucht wird, dann haben die Sinus ihre geschlossene Wand verloren und die durch die Vasa afferentia einströmende Lymphe wird nicht nur durch die Sinus in die Vasa efferentia abgeführt, sondern durchtränkt auch die Maschen des adenoiden Gewebes. Man könnte dann sagen, daß in den Lymphknoten die Lymphbahn wandungslos, nicht mehr geschlossen, sondern „offen“, „unterbrochen“ sei. Das gleiche müßte dann auch für die Blutlymphknoten und für die Milz gelten, nur mit dem Unterschied, daß bei diesen die Blutbahn die offene ist.
Die Entstehungsorte der Lymphozyten nehmen bei allen Lymphknoten einen breiten Raum ein; sie bilden ein lymphozytenreiches Gewebe, das gewöhnlich an der Oberfläche des Lymphknotens besonders reichlich vorkommt, so daß man diesen Teil als „Rinde“ dem „Marke“ gegenüberstellt. Hier findet die hauptsächliche Lymphozytenbildung statt. Sehr zahlreich treffen wir hier heller aussehende, fast kugelige sogenannte Keimzentren (Fig. 114), die zytoplasmareiche Zellen, die Lymphoblasten, enthalten. Aus diesen entstehen durch mitotische Teilungen Lymphozyten. Rings um die Keimzentren liegen massenhaft Lymphozyten konzentrisch geschichtet; die Keimzentren mit ihrer Umgebung bezeichnet man als Sekundärknötchen; sie sind das charakteristische Element aller lymphatischen Organe.
Im Innern der Keimzentren sind häufig sogenannte tingible Körper (Fig. 115A) anzutreffen; es sind Reste von degenerierenden Zellen. Wie häufig an Stellen lebhafter Zellvermehrung so gehen auch hier zahlreiche Zellen zugrunde.
Weniger lebhaft ist die Lymphozytenproduktion in den sogenannten Marksträngen der Lymphknoten, die von den Sekundärknötchen aus sich schwammartig durch den ganzen Lymphknoten erstrecken.
Die Grundlage von Rinden- und Marksubstanz ist retikuläres Gewebe. Außer Lymphoblasten und Lymphozyten findet man in seinen Maschenräumen vereinzelt Plasmazellen, eosinophile und Mastzellen (s. S. 94), endlich Lymphozyten, die keinen runden, sondern einen gelappten Kern besitzen und deswegen als „leukozytoide Lymphozyten“ bezeichnet werden (!). Echte gelapptkernige Leukozyten finden sich meist innerhalb der Blutgefäße.
Dieses gesamte lymphozytenproduzierende Gewebe ist allseitig von Lymphräumen umgeben, die ihrerseits wieder von dem Bindegewebsgerüst der Trabekel gestützt werden. Die Sinus werden, wohl nicht überall, von einer einfachen Lage platter Zellen ausgekleidet, welche sowohl der Oberfläche der Sekundärknötchen und Markstränge, wie auch der Oberfläche der Trabekel anliegen; mit ihnen steht auch das überall die Sinus durchsetzende und das lymphatische Gewebe tragende retikuläre Gewebe in Verbindung. Die Sinus sind keine einfachen, sondern schwammartig gebaute Hohlräume, deren Wandung ebenso wie die das Lumen durchsetzenden Stränge Zellen und Stützfasern enthält (s. S. 99 und Fig. 45).
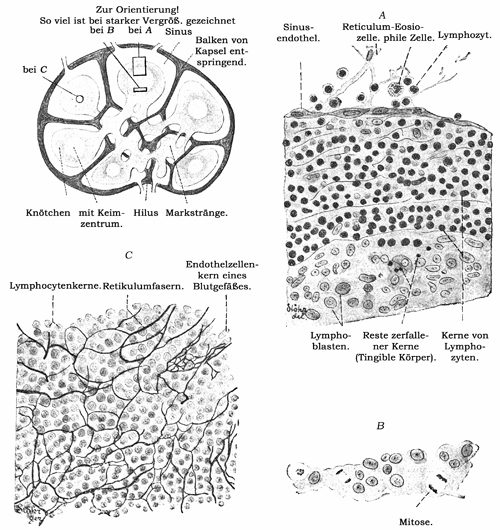
Fig. 115.
A Stück eines Schnittes durch einen submaxillaren Lymphknoten eines Hingerichteten. 560mal vergrößert. Technik Nr. 78, S. 199. B aus demselben Schnitt und dem gleichen Keimzentrum, nur von einer anderen Stelle. C Stück eines Schnittes desselben Lymphknotens. Retikulum eines Sekundärknötchens. 560mal vergrößert. Technik 11, S. 39.
Die Lymphe ergießt sich von den Vasa afferentia durch die Kapsel in den Randsinus; von ihm aus gelangt sie durch die Intermediärsinus in die Sinus der Markregion, die endlich in das Vas efferens überleiten. So setzt sich auch die Epithelauskleidung von den Vasa afferentia auf den Randsinus, von den Marksinus auf das Vas efferens fort. Über die Kontinuität der Epithelauskleidung innerhalb des Lymphknoten selbst s. S. 185.
Die Kapsel besteht aus Bindegewebe, das kollagene und elastische Fasern einschließt, die in wechselnder, mit dem Alter zunehmender Menge, vorhanden sind, ferner aus glatten Muskelfasern, welche in den großen Lymphknoten des Rindes zu großen Zügen vereint sind. Die ebenso gebauten Trabekel schieben sich zwischen Sekundärknötchen und Markstränge, berühren dieselben aber nicht, sondern sind von ihnen durch die Lymphsinus getrennt.
Der hier geschilderte Bau der Lymphknoten ist aber insofern schwierig zu erkennen, als mancherlei Komplikationen sich vorfinden. Diese Komplikationen bestehen darin, 1. daß benachbarte Sekundärknötchen oft miteinander verschmelzen, 2. daß sich die Markstränge miteinander zu einem groben Netzwerke verbinden, 3. daß ebenso die Trabekel ein zusammenhängendes Netzwerk bilden, 4. daß das Netz der Markstränge und das der Trabekel ineinander greifen (Fig. 115, Orientierungsfigur), 5. daß die Lymphsinus mit Lymphozyten gefüllt sind, welche erst durch besondere Methoden entfernt werden müssen. Auf diese Weise bilden Sekundärknötchen, Markstränge und die Lymphozyten der Lymphsinus eine weiche Substanz, die „Pulpa“ (Parenchym der Lymphknoten) genannt worden ist.
Die Blutgefäße der Lymphknoten treten teils an verschiedenen Stellen der Oberfläche, größtenteils aber am Hilus ein. Die von der Oberfläche eintretenden feinen Blutgefäße verteilen sich in der Kapsel und in den gröberen Trabekeln, in deren Achse sie verlaufen. Die am Hilus eintretende, größere Arterie teilt sich in mehrere Äste, die daselbst von reichlicher entwickeltem Bindegewebe umgeben sind. Die Äste verlaufen zum geringeren Teile in den Trabekeln weiter, zum größeren Teile gelangen sie, die Lymphsinus durchsetzend, in die Markstränge und von da in die Sekundärknötchen; an beiden Stellen lösen sich die Blutgefäße in ein wohlentwickeltes Kapillarnetz auf, welches die zur Bildung der Lymphozyten nötige Sauerstoffmenge liefert. Die Venen treten am Hilus aus.
Die in die Achse der Sekundärknötchen eintretenden Arterien lösen sich in gestreckte, nicht miteinander anastomosierende Kapillaren auf, welche in ein am Rande des Knötchens gelegenes Maschenwerk venöser Kapillaren übergehen, aus dem stärkere Venen entspringen. Es liegen hier zum Teil ganz ähnliche Verhältnisse vor, wie bei der Milz.
Die spärlichen Nerven der Lymphknoten sind teils markhaltige, teils marklose Faserbündel, die im wesentlichen reich verästelte Geflechte um die Blutgefäße bilden; auch in der Kapsel und in den Trabekeln, nicht aber in den Knötchen sind Nerven gefunden worden.
Blutlymphknoten (= Hämolymphdrüsen; rote Lymphdrüsen).
Als solche bezeichnet man den echten Lymphknoten im Bau sehr ähnliche Organe, die sich dadurch unterscheiden, daß die den Sinus echter Lymphknoten entsprechenden Räume Blut enthalten („Bluträume“). Die Blutgefäße verhalten sich (beim Schaf) gleich denen der Milz; es finden sich auch Unterbrechungen der Blutbahn (vgl. S. 192), so daß die Blutzellen frei in das Retikulum des adenoiden Gewebes und von da in die Bluträume gelangen können. Die Abfuhr erfolgt durch Vermittlung der Venenlakunen (siehe Milz). Lymphgefäße fehlen in ausgeprägten Fällen (z. B. beim Schaf), sind jedoch in anderen vorhanden. Eine Bildung von Erythrozyten findet in den Blutlymphknoten nicht statt; im Gegenteil, es gehen solche daselbst zugrunde. Beweis hierfür ist die Anwesenheit von zerfallenden Erythrozyten, von Phagozyten, die Erythrozyten (oder Trümmer solcher) und Pigmentschollen enthalten.
Die Blutlymphknoten erzeugen wie die echten Lymphknoten, mit denen sie durch mannigfache Übergänge verbunden sind, Lymphozyten, die durch die Venen abgeführt werden. Über ihr Vorkommen s. Technik Nr. 81, S. 200.
Neuerdings werden sie als Degenerationsformen echter Lymphknoten aufgefaßt. Am häufigsten werden solche Blutlymphknoten in der hinteren Bauchwand aufgefunden.
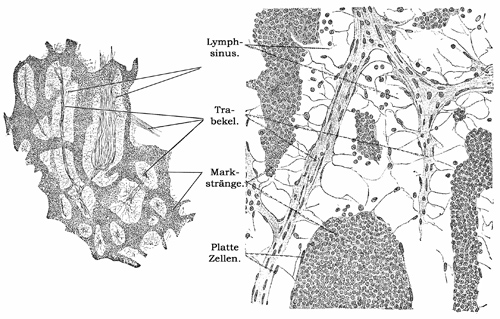
Fig. 116. Fig. 117.
Stück eines Schnittes durch die Marksubstanz eines Lymphknotens des Rindes. In der oberen Hälfte sind die Trabekel und Markstränge der Länge, in der unteren Hälfte der Quere nach durchschnitten. Beide bilden ein zusammenhängendes Netzwerk. In den Lymphsinus sieht man die feinen Fasern des retikulären Bindegewebes, welches zum Teil noch Leukozyten enthält; Zeichnung bei wechselnder Tubuseinstellung. 50mal vergrößert. Ebendaher. 240mal vergrößert.
Technik beider Präparate Nr. 80, S. 200.
Die peripherischen Lymphknötchen. (Noduli lymphatici.)
Das weiße Blutzellen einschließende retikuläre Bindegewebe ist nicht nur auf die Lymphknoten beschränkt; es findet sich auch in großer Ausdehnung in vielen Schleimhäuten, und zwar in verschiedenen Entwicklungsgraden, bald als diffuse, bald als schärfer begrenzte Infiltration von Lympho- und Leukozyten. Diese Formationen werden nicht zum Lymphsystem gerechnet. Es gibt aber noch einen höheren Grad der Ausbildung, in welchem den Sekundärknötchen der Lymphknoten ganz ähnliche Knötchen („Follikel“) der Schleimhaut mit Keimzentrum bestehen. Diese hat man zum Lymphsystem gerechnet und peripherische Lymphknötchen genannt. Sie sind in vielen Schleimhäuten entweder vereinzelt: Solitärknötchen (Noduli lymphatici solitarii, „solitäre Follikel“), oder in Gruppen: gehäufte Knötchen (Nod. lymph. aggregati, „Peyersche Haufen“) zu finden und liegen in stets einfacher Schicht in der Tunica propria (s. Verdauungsorgane) dicht unter dem Epithel. Verbreitung und Zahl der peripherischen Lymphknötchen ist nicht nur bei den einzelnen Tierarten, sondern selbst bei einzelnen Individuen erheblichen Schwankungen unterworfen; da auch ihre Größe bedeutend differiert und vielfache Übergänge zu zirkumskripten und diffusen Infiltrationen bestehen, so ist es sehr wahrscheinlich, daß sie während des Lebens werden und vergehen, also nur temporär auftreten. Sie besitzen dieselben Zellen wie die eigentlichen Lymphknoten, unterscheiden sich aber von diesen neben dem Fehlen von Kapsel und Trabekeln, vor allem durch ihre minder innigen Beziehungen zu den Lymphgefäßen, welche hier keine die Knötchen (Follikel) umgreifende Sinus bilden. Ihre Beizählung zum Lymphgefäßsystem scheint insofern eine berechtigte, als auch sie (in dem Keimzentrum) Brutstätten von Lymphozyten sind. Dieselben gelangen jedoch nur zum Teil in die Lymphgefäße; viele wandern vielmehr durch das Epithel auf die Schleimhautoberfläche (s. auch bei Zungenbälge).
Milz.
Die Milz ist ein den Blutlymphknoten besonders insofern nahestehendes Organ, als sie die Stätte des Untergangs vieler Erythrozyten, der Neubildung vieler weißer Blutzellen darstellt, die durch die Venen abgeführt werden. Sie besteht außer vielen Blutgefäßen aus einer Kapsel, aus Balken und aus der Pulpa.
Die Kapsel ist fest mit dem sie überziehenden Bauchfell verwachsen, und besteht vorzugsweise aus derbfaserigem Bindegewebe, wenigen glatten Muskelfasern und dichten Netzen elastischer Fasern, deren Menge im Alter zunimmt. Von der Kapsel ziehen zahlreiche, meist strangförmige Fortsetzungen, die Milzbalken (Fig. 118), in das Innere der Milz und bilden dort ein zusammenhängendes Netzwerk; sie bestehen ebenfalls aus Bindegewebe, elastischen Fasern und beim Menschen spärlichen, bei Tieren (z. B. Hund, Katze) reichlichen glatten Muskelfasern. Dadurch ist die Kapsel imstande, ein starkes An- und Abschwellen des Organs zuzulassen. Die dickeren Balken enthalten die gröberen Blutgefäßverästelungen. Die Maschen des Balkennetzes werden ausgefüllt von der Pulpa, einer roten, weichen, aus retikulärem Gewebe und kleineren Blutgefäßen bestehenden Masse, deren feinerer Bau nur durch Beachtung der Blutgefäßanordnung verständlich werden kann.
Die am Hilus eintretenden Arterien teilen sich in Äste, die zusammen mit den Venen weiterhin in Balken eingeschlossen sind (Fig. 119). Dann trennen sich die Arterien von den Venen, ihre von den Balken gelieferte Hülle (die „adventitielle Scheide“), sowie ihre Tunica externa wird gelockert durch Einlagerung zahlreicher weißer Blutzellen. Diese können entweder als kontinuierlicher Belag den ganzen Verlauf der Arterien begleiten (z. B. beim Meerschweinchen) oder nur auf einzelne Stellen beschränkt sein (Mensch, Katze usw.). In letzterem Falle bilden sie kuglige Ballen von 0,2-0,7 mm Größe, die Milzknötchen (Malpighischen Körperchen), oder langgestreckte Spindeln (Fig. 119 am rechten Arterienast).
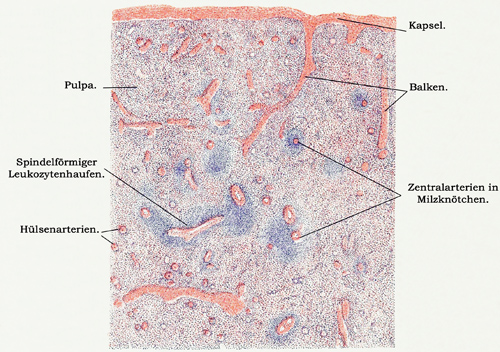
Fig. 118.
Stück eines Schnittes der Milz des erwachsenen Menschen. 15mal vergr. Technik Nr. 83, S. 200.
Die Milzknötchen sitzen mit Vorliebe in den Astwinkeln der kleinen Arterien, und zwar so, daß die Arterie entweder die Mitte oder den Rand des Knötchens durchbohrt. Deswegen heißen diese Arterien Zentralarterien; sie geben Kapillaren ab, welche gering in den Spindeln, gut aber in den Knötchen entwickelt sind. Die langgestreckten, nicht miteinander anastomosierenden Endäste der Arterien, die sogenannten Pulpaarterien, sind kurz vor ihrem Übergang in Kapillaren mit relativ dicken Wandungen versehen, sie heißen dort Hülsenarterien, die aus diesen entspringenden arteriellen Kapillaren münden unter spitzem Winkel in weite (12-40 µ) Räume, die Milzsinus (Venenlakunen), welche durch weite Pulpavenen mit den in den Balken verlaufenden großen Venen zusammenhängen.
Man kann an injizierten und mazerierten Milzen die Pulpa ausspülen, dann sieht man die langgestreckten Endäste der Arterien in ganzen Büscheln (Penizilli, Pinsel) beisammenliegen.
Die nur 0,15-0,25 mm lange Hülsenarterie ist von besonderem Bau; hier ist das Gefäßepithel(-endothel) von einer dicken Lage längsverlaufender Fasern umgeben, die der streifigen Bindesubstanz mitteldicker Arterien gleichen. Der konstante Durchmesser (6-8 µ) der Hülsenarterien läßt vermuten, daß sie zur Regulierung des arteriellen Blutstromes dienen, indem sie eine allzurasche Überschwemmung der Sinus und des Milzparenchyms verhindern. Sie sind bei Tieren (z. B. beim Igel, Hund, Schwein) sehr stark entwickelt, beim Menschen zuweilen leicht und in großer Anzahl (Fig. 118), oft aber nur schwer zu finden.
Die größeren ganz oder teilweise in die Balken eingeschlossenen Venen besitzen außer ihrem Epithel keine eigene Wand, während die Balkenarterien ihre Wandschichten auch im Balkenabschnitt beibehalten.
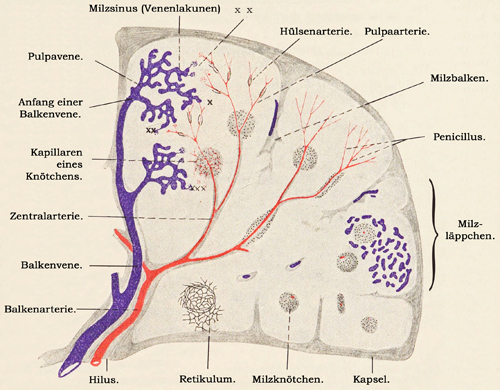
Fig. 119.
Schema der menschlichen Milz. × Mündung der arteriellen Kapillaren in die Milzsinus. × × Unterbrechung der geschlossenen Blutbahn an den Enden der arteriellen Kapillaren, × × × am Rande der Knötchen. (Die Milzsinus sind der Deutlichkeit halber zu weit entfernt vom Knötchenrande gezeichnet.)
Der funktionell wichtigste Abschnitt dieses Gefäßsystems sind die Milzsinus (Fig. 119), deren Wand ein gitterförmiges Plasmodium ist; die in der Längsrichtung der Sinus verlaufenden Anteile des Plasmodiums sind zytoplasmatisch geblieben und enthalten die in das Lumen stark vorspringenden Kerne. Die quer verlaufenden Züge des Gitters sind beim Menschen fast vollständig zu Stützfasern umgewandelt (sogenannte Ringfasern), die mit den Retikulumfasern des Pulparetikulums allenthalben zusammenhängen. Durch die so gebildeten Lücken treten Blutkörperchen in beiden Richtungen hindurch.
Durch die Kenntnis des Aufbaues der Sinuswand ist ein hinreichendes Verständnis dafür gegeben, daß in der Pulpa sehr reichlich Erythrozyten angetroffen werden. Die sehr problematische Annahme einer „freien“ Ausmündung der Arterien in die Maschen des retikulären Gewebes ist unnötig geworden. Da die Milzsinus einmal sehr eng, in anderen Fällen wieder weit erscheinen, muß man mit einer Kontraktilität der Wandung rechnen, wodurch auch die Wandlücken einmal eng, ein andermal weit sein werden. Damit ist also die Möglichkeit einer weitgehenden Regulation gegeben. Manche Autoren nehmen an, daß die Poren in der Gitterwand der Venensinus durch eine sehr wenig widerstandsfähige zytoplasmatische Haut geschlossen sind.
Die durch Isolation darzustellenden sogenannten Milzfasern (Fig. 120) sind nur Bruchstücke des plasmodialen Retikulums der Sinuswand und geben kein vollständiges Bild von deren Zusammensetzung.
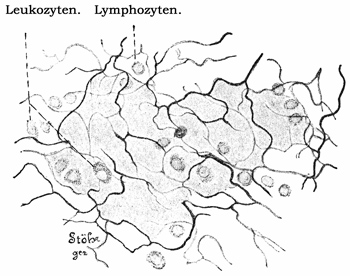
Fig. 120.
Retikuläres Bindegewebe der menschlichen Milz. 560mal vergr. Nach Technik Nr. 11, S. 39.
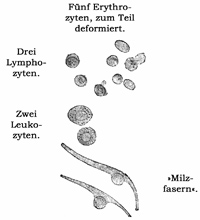
Fig. 121.
Elemente der menschlichen Milz. 560mal vergr. Techn. Nr. 82, S. 200.
Das grobe Bindegewebsgerüst (Kapsel) und (Trabekel) und das beschriebene Gefäßnetz bilden den stabilen Teil der Milz; zwischen ihnen befindet sich ein dicht gebautes, retikuläres Gewebe (Fig. 120), das allenthalben mit den groben Gerüstteilen und den Gefäßwänden in Verbindung steht und in sehr wechselndem Maße mit freien Zellen angefüllt ist. Die Größenschwankungen, die bei der Milz sehr oft unter normalen wie pathologischen Umständen beobachtet werden, entstehen größtenteils durch Zu- oder Abnahme dieser freien Zellen. Das gesamte Zwischengewebe (einschließlich der außerhalb der Balken verlaufenden Gefäße) bezeichnet man als Pulpa.
Die oben erwähnten Lymphzellenansammlungen in der Arterienwand (Milzknötchen, auch weiße Pulpa genannt) stimmen hinsichtlich ihres feineren Baues mit den Sekundärknötchen der Lymphknoten überein; sie enthalten sogar Keimzentren und gewöhnlich feine elastische Fasern. Sie bilden sich zeitweise zurück und an anderen Stellen wieder neu aus.
Das verwirrendste Bild bietet der übrige Teil des außerhalb der Gefäße liegenden Milzgewebes dar. In ihm werden Erythrozyten in allen Stadien des Zerfalles (Fig. 121), teilweise von Makrophagen aufgenommen, teilweise frei angetroffen; auch die verschiedenen Formen von Lympho- und Hämoleukozyten finden sich hier vor. Wie wir oben sahen, kommen diese Blutzellen höchst wahrscheinlich durch die Poren in der Wand der Venensinus in das retikuläre Gewebe hinein.
Hier werden in großer Zahl rote, jedenfalls abgenutzte Blutzellen zerstört, gleichzeitig werden Lymphozyten dem Milzvenenblut zugefügt; dieses enthält 70mal mehr weiße Blutzellen als das Blut der Milzarterie.
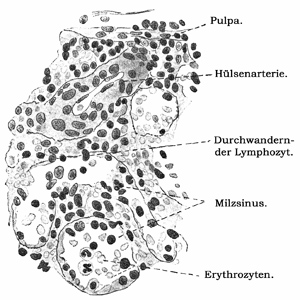
Fig. 122.
Stück eines dünnen Schnittes durch die menschliche Milz. 400mal vergr. Technik Nr. 83, S. 200.
Die Lymphgefäße sind an der Oberfläche der Milz bei Tieren reich, beim Menschen dagegen nur spärlich entwickelt. Tiefe, im Innern der Milz verlaufende Lymphgefäße fehlen.
Die aus spärlichen markhaltigen Fasern und vielen nackten Achsenzylindern bestehenden Nerven treten mit den Arterien in die Milz und verzweigen sich mit diesen. Während ihres Verlaufes geben sie Äste zur Muskulatur der Arterien (Fig. 123) und der Milzbalken ab. Auch in der Milzpulpa finden sich Geflechte markloser Nervenfasern, die zum Teil sensibler Natur sind und vermutlich von den Verästelungen der eben erwähnten markhaltigen Nervenfasern herrühren.
Die unverletzte Oberfläche der Milz zeigt häufig eine Abgrenzung in rundliche Läppchen; der Versuch, auch an Durchschnitten eine Einteilung in Läppchen zu treffen, läßt sich an der menschlichen Milz nicht scharf durchführen, doch kann man immerhin zunächst der Milzoberfläche Balken mit den darin befindlichen Venen als Grenzen von Läppchen betrachten und konstatieren, daß die Arterien möglichst weit von den „interlobulären“ Balkenvenen, in der Achse der Läppchen gelegen sind (vgl. Schema Fig. 119). In der Tiefe der Milz ist eine Läppcheneinteilung nicht mehr möglich.
Technik.
Nr. 62. Farbige Blutzellen des Menschen. Man reinige einen Objektträger und ein kleines Deckglas sorgfältig (zuletzt mit Alkohol). Dann steche man sich mit einer durch Glühen kurz vorher gereinigten Nadel in die Seite der Fingerspitze: der zuerst hervortretende Blutstropfen wird durch leichtes Aufdrücken des Deckglases aufgefangen, das Deckglas rasch auf den Objektträger gelegt, auf den man vorher einen kleinen Tropfen 0,9%iger Kochsalzlösung gebracht hat. Man erblickt bei starker Vergrößerung oft viele mit den Flächen aneinander geklebte farbige Blutzellen. „Geldrollenformen“ (Fig. 98), sowie isolierte farbige und farblose Blutzellen. Die zackigen Ränder mancher Blutzellen sind durch Verdunstung entstanden. Setzt man an der einen Seite einen Tropfen Wasser an den Rand des Deckglases, so tritt alsbald eine Entfärbung der Blutzellen ein; das Hämoglobin tritt aus, wodurch das Wasser gelblich wird; dabei werden die Blutzellen kugelrund, erscheinen nur mehr als blasse Kreise, „Schatten“, die schließlich ganz verschwinden. Es empfiehlt sich, die Entfärbung an einer Blutzelle zu studieren.
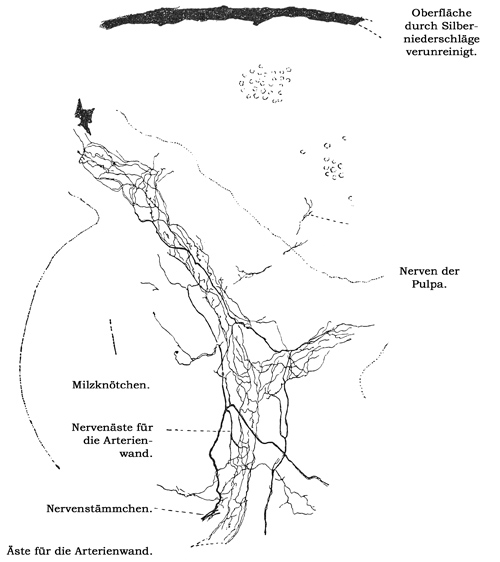
Fig. 123.
Schnitt durch die Milz einer Maus. 85mal vergrößert. Die hier auf ihrer ganzen Länge mit Leukozyten infiltrierte Arterienscheide ist durch eine punktierte Linie gegen die Pulpa abgegrenzt. Technik Nr. 86, S. 201.
Nr. 63. Dauerpräparate farbiger Blutzellen fertigt man an, indem man auf einen sorgfältig gereinigten Objektträger mit einem Pinsel frisch dem lebenden Körper entnommenes Blut in möglichst dünner Lage aufstreicht und an der Luft trocknen läßt. Das getrocknete Präparat wird mit einem trockenen Deckglase bedeckt und dieses an den Rändern mit Deckglaskitt fixiert (s. S. 44, 2). Neben vielen verunstalteten Formen findet man einzelne in Form und Größe wohlerhaltene Blutzellen.
Nr. 64. Für Dauerpräparate farbiger und farbloser Blutzellen bedient man sich der Trockenmethode Ehrlichs[97]. Es muß vorausgeschickt werden, daß diese Methode bei genauer Berücksichtigung aller angegebenen Vorschriften und bei einiger Übung in mancher Hinsicht gute Resultate ergibt, daß aber bei ungeschickter Behandlung eine Menge von Zerrbildern entstehen, die dem Unerfahrenen mancherlei Täuschung vorspiegeln. Wer mit dieser Methode neues entdecken will, muß sehr geübt und sehr vorsichtig im Urteil sein.
Vorbehandlung. Vor der Blutabnahme wird die betreffende Hautstelle (Fingerspitze) mit Äther gereinigt. Die dünnen Deckgläschen, die nicht über 0,1 mm dick sein dürfen, werden zuerst ein paar Minuten in verdünnte Salzsäure, dann in destilliertes Wasser gelegt und schließlich mit Alkohol gereinigt. Am besten nimmt man noch nie gebrauchte Deckgläser. Zu je einem Blutpräparat braucht man zwei Deckgläser. Dann bereite man eine Mischung von gleichen Teilen absoluten Alkohols und Schwefeläthers (etwa je 5 ccm), befeuchte damit ein Bäuschchen reiner Watte und reinige die Fingerspitze nochmals. Nun mache man mit einer nicht zu anatomischen Zwecken benutzten reinen Nadel einen Einstich in die durch Kompression etwas hyperämisch gemachte Fingerspitze, auf den hervorquellenden kleinen Blutstropfen wird ein Deckgläschen leicht aufgedrückt, das mit einer Pinzette (nicht mit den Fingern) gehalten wird, und dann auf das zweite Deckgläschen gelegt. Zwischen den beiden Gläschen breitet sich der Blutstropfen in dünner Schicht aus; sofort werden die beiden Deckgläschen, die man so aufeinander gelegt hat, daß der Rand des einen etwas überragt, mit zwei Pinzetten auseinandergezogen. Durch diese Manipulation wird der Einfluß des verdunstenden Schweißes auf die Blutzellen verhindert, die sonst ihr Hämoglobin verlieren oder schrumpfen.
Sobald das Blut auf dem Deckgläschen an der Luft eingetrocknet ist (nach wenigen Minuten) werden die Gläschen in die mit Alkoholäther gefüllte Schale zur Fixierung eingelegt. Nach 1/4-2 Stunden nimmt man die Gläschen wieder heraus, läßt sie an der Luft wieder trocknen und beginnt nun (ca. 5 Minuten nach der Alkoholätherfixierung) entweder sofort oder beliebig später die Weiterbehandlung.
Die fixierten Trockenpräparate können lange aufbewahrt werden.
Weiterbehandlung. a) Für oxyphile (eosinophile, α-) Granulationen. Man lege das Trockenpräparat auf 24 Stunden in ca. 4 ccm destilliertes Wasser, dem man etwa 10 Tropfen Eosinlösung (S. 9) zugesetzt hat. Dann spüle man einige Minuten in destilliertem Wasser ab und färbe 1-5 Minuten in einer Uhrschale mit Hansenschem Hämatoxylin (S. 32). Dann übertragen in destilliertes Wasser, nach 5 Minuten herausnehmen und an der Luft unter einer Glasglocke trocknen lassen. Das trockene Präparat wird nun direkt mit einem Tropfen Xylolbalsam bedeckt und so konserviert. Die farbigen Blutzellen und die oxyphilen Granulationen der farblosen Blutzellen sind leuchtend rot, die Kerne blau gefärbt. Die oxyphilen Granulationen finden sich nur spärlich (2-4%) in den Leukozyten des normalen Blutes, ferner in den Leukozyten der Lymphe und der Gewebe; sehr viele sind im Knochenmark des Kaninchens vorhanden; zum Aufsuchen genügen meist mittlere Vergrößerungen (400/1).
b) Für basophile (Mastzellen-) Granulationen, welche sich sehr spärlich (höchstens 0,5%) in normalem Blute finden, färbe man das Trockenpräparat nach der Nr. 17, S. 116 angegebenen Methode. Nach vollendeter Färbung verfahre man wie bei a).
c) Für neutrophile (ε-) Granulationen. Man löse 1. 1 g „Orangegelb extra“ in 50 ccm destilliertem Wasser, 2. 1 g „Säurefuchsin extra“ in 50 ccm destilliertem Wasser, 3. 1 g kristallisiertes Methylgrün in 50 ccm destilliertem Wasser und lasse die drei Lösungen durch Absetzen klar werden. Dann mische man von Lösung 1: 11 ccm, von Lösung 2: 10 ccm, gieße 20 ccm destilliertes Wasser und 10 ccm absoluten Alkohol hinzu; dieser Mischung werden zugesetzt eine Mischung von Lösung 3: 13 ccm + Aqua destill. 10 ccm + Alk. absol. 3 ccm. Das Ganze bleibt bis zum Gebrauche 1-2 Wochen stehen. In diese am besten von Dr. Hollborn (Adr. S. 3) zu beziehende „Triazidlösung“ wird das Trockenpräparat 15 Minuten eingelegt, dann abgewaschen, getrocknet und in Xylolbalsam konserviert wie bei a). Die neutrophilen Granulationen, welche sich in den gelapptkernigen Leukozyten normalen und anderen Blutes finden, sind von violetter Farbe und leicht mit den gewöhnlichen starken Trockenlinsen zu sehen, die oxyphilen Granulationen und die farbigen Blutzellen sind gelbbraun bis schokoladebraun gefärbt, die Kerne sind leuchtend blaugrün, doch sind ihre Umrisse nicht so scharf wie an den Hämatoxylinpräparaten.
Nr. 65. Die Blutplättchen erhält man, indem man vor dem Stiche in den Finger auf diesen einen Tropfen einer filtrierten Mischung von ca. 5 Tropfen wässerigem Methylviolett (S. 9) mit ca. 5 ccm Kochsalzlösung (S. 3) bringt und durch den Tropfen in den Finger sticht. Das heraustretende Blut mischt sich mit dem Methylviolett, ein Tropfen davon wird mit der Deckglasunterfläche aufgefangen und bei starker Vergrößerung untersucht. Die Plättchen sind intensiv blau gefärbt, von eigentümlichem Glanze, scheibenförmig (Fig. 98) und nicht zu verwechseln mit den gleichfalls gefärbten weißen Blutzellen. Ihre Menge ist individuell sehr verschieden; im Blute des einen sind sie in großer Menge, im Blute des anderen nur ganz vereinzelt zu finden. Man hüte sich vor Verwechslungen mit körnigen Verunreinigungen, die auch in der filtrierten Farblösung vorkommen.
Nr. 66. Farbige Blutzellen von Tieren (Frosch). Vorbereitung. Man reinige sorgfältig einen Objektträger und ein Deckglas (zuletzt mit Alkohol). Ein kleiner Tropfen des dem frisch getöteten Tiere (S. 11) entnommenen Blutes wird mit einem Glasstab auf das Deckglas übertragen und dieses rasch auf einen Objektträger gelegt, auf den man vorher einen kleinen Tropfen Kochsalzlösung (0,65%) gebracht hatte. Die Kerne der farbigen Blutzellen sind anfangs undeutlich, die der viel kleineren weißen Blutzellen überhaupt nicht zu sehen. Im Frühjahr enthalten die farbigen Blutzellen mancher Frösche gar kein Hämoglobin, so daß dann nur deren Kerne zu sehen sind.
Nr. 67. Für forensische Zwecke, in denen es sich ja meistens um Untersuchung schon eingetrockneten Blutes handelt, weiche man kleine Partikelchen in 35%iger Kalilauge auf dem Objektträger auf; blutbefleckte Leinwandstückchen zerzupfe man in einem Tropfen Kalilauge. Obwohl die farbigen Blutzellen unserer einheimischen Säugetiere kleiner sind als die des Menschen, so ist es doch unmöglich, aus der Größe der Blutzellen die Frage zu entscheiden, ob das Blut vom Menschen oder vom Säugetiere stamme. Leicht ist es dagegen, die ovalen Blutzellen der anderen Wirbeltiere von den scheibenförmigen der Säuger zu unterscheiden.
Nr. 68. Farblose Blutzellen, Leukozyten in Bewegung finden sich in dem nach Nr. 66 hergestellten Präparate. Zum Studium der Bewegung wähle man solche Leukozyten, deren Protoplasma teilweise körnig ist und die nicht rund sind. Die Bewegungen erfolgen langsam; man kann sich am besten davon überzeugen, wenn man in Intervallen von 1-2 Minuten kleine Skizzen eines und desselben Leukozyten verfertigt. Starke Vergrößerung (Fig. 100).
Nr. 69. Blutkristalle. a) Die Herstellung der Häminkristalle ist leicht. Man schneide ein Läppchen (von ca. 3 mm Seite) einer blutgetränkten, trockenen Leinwand aus und bringe es mit einem höchstens stecknadelkopfgroßen Stückchen Kochsalz auf einen reinen Objektträger. Dann gebe man mehrere große Tropfen Eisessig hinzu und stoße mit einem stumpfen Glasstabe Salz und Leinwand, bis der Eisessig sich bräunlich färbt (ca. 1 Minute). Dann erhitze man den Objektträger über der Flamme, bis der Eisessig kocht. Nun nehme man das Läppchen rasch weg, lasse die Flüssigkeit eintrocknen und untersuche die trockenen braunen Stellen auf dem erkalteten Objektträger mit starker Vergrößerung (von 240mal an). Man sieht zuweilen schon ohne Deckglas, ohne Konservierungsflüssigkeit die braunen Kristalle (Fig. 99, 1) neben zahlreichen Fragmenten von weißen Kochsalzkristallen. Zum Konservieren bedecke man den Objektträger direkt mit einem großen Tropfen Xylolbalsam und einem Deckglase. Form und Größe der Häminkristalle ist sehr verschieden. Man erhält von demselben Blut gut ausgebildete Kristalle, teils einzeln, teils kreuzweise übereinanderliegend, teils zu Sternen vereint (Fig. 99), neben wetzsteinähnlichen Formen und kleinsten, kaum die Kristallform zeigenden Partikelchen. Der Nachweis der Häminkristalle ist in forensischer Hinsicht von großer Wichtigkeit. So leicht es oft ist, aus größeren Flecken an Kleidungsstücken die Kristalle herzustellen, so schwierig ist es, von kleinen Flecken besonders an rostigem Eisen den Nachweis zu liefern, daß sie von Blut stammen. Die bei solchen Untersuchungen zu verwendenden Instrumente und Reagenzien müssen absolut rein sein.
b) Hämatoidinkristalle findet man beim Zerzupfen alter Blutextravasate, die schon makroskopisch durch ihre rotbraune Farbe kenntlich sind (z. B. in apoplektischen Zysten im Corpus luteum) (Fig. 99, 3).
c) Hämoglobinkristalle stellt man her, indem man etwa 5 ccm Hundeblut in ein Reagiergläschen bringt, ein paar Tropfen Schwefeläther zufügt und dann so lange stark schüttelt, bis das Blut lackfarben wird. Dann breite man einige Tropfen auf dem Objektträger aus und lasse das Präparat in der Kälte trocknen. Nach erfolgter Kristallbildung setze man einen Tropfen Glyzerin zu und lege ein Deckglas auf. Die großen Kristalle zeigen oft Neigung, in Längsfasern zu zerfallen (Fig. 99, 4a).
Nr. 70. Neubildung von Kapillaren. Man töte ein 7 Tage altes Kaninchen durch Chloroform, spanne es mit Nadeln auf (S. 11), eröffne durch einen Kreuzschnitt die Bauchhöhle, nehme rasch Milz, Magen und das daran hängende große Netz heraus und lege diese Teile in ca. 80 ccm gesättigte, wässerige Pikrinsäurelösung (S. 6, Nr. 19). Hier breitet sich das sonst schwer abzulösende große Netz leicht aus. Nach 1 Stunde schneide man dasselbe ab, übertrage es in 60 ccm destilliertes Wasser und teile es mit der Schere in ca. 1 qcm große Stücke. Ein solches Stück wird auf einen trockenen Objektträger gebracht (das Wasser durch Fließpapier abgesogen), und dann mit Nadeln möglichst glatt ausgebreitet, was um so leichter gelingt, je weniger Flüssigkeit dem Präparat anhängt. Die sehr zarten jungen Kapillaren können dabei durch Zerrung leicht von den älteren Kapillaren losgerissen werden und imponieren dann als „isolierte, blutkörperchenhaltige Zellen“; man hat solche Kunstprodukte (und auch Rückbildungsformen von Kapillaren) als „vasoformative Zellen“ beschrieben. Das Netz ist auch beim Lebenden vielen Zerrungen ausgesetzt, die vielleicht gleichfalls zur Trennung junger Kapillaren von ihrer Ursprungsstelle führen können. Nunmehr bringe man 1 bis 2 Tropfen Hansensches Hämatoxylin auf das Präparat. Nach 1-5 Minuten lasse man das Hämatoxylin ablaufen und lege den Objektträger mit dem Präparate in eine flache Schale mit destilliertem Wasser; das Präparat wird sich bald vom Objektträger abheben, bleibt aber glatt und wird nun nach 5 Minuten mit dem Spatel in ein Uhrschälchen voll Eosin (s. S. 9) übertragen, wo es 3 Minuten verbleibt. Dann wird das Präparat in destilliertem Wasser eine Minute lang ausgewaschen und auf den Objektträger gebracht; das Wasser wird wieder mit Filtrierpapier abgesogen, etwaige Falten mit Nadeln ausgeglichen und endlich ein Deckglas, an dessen Unterseite ein Tropfen verdünnten Glyzerins angehängt ist, aufgesetzt. Man kann statt Glyzerineinschluß auch Xylolbalsam (d. h. Alkohol abs., Karbolxylol, Balsam) nehmen, doch gehen feinere Details leicht verloren. Die roten Blutzellen sind durch Eosin glänzend rot gefärbt (Fig. 102).
Nr. 71. Kreislauf im Omentum maius. Das große Netz eines Kaninchens, dem die Bauchgefäße injiziert waren (s. S. 43), wird nach Fixation in Formalin 10% vorsichtig am Magen abgeschnitten, in Hansens Hämatoxylin (S. 32), dann in Sudan III (s. Technik Nr. 30, S. 118) gefärbt; schließlich wird ein Stück sorgfältig auf einen Objektträger ausgebreitet und in Glyzerin (s. S. 44) eingeschlossen (Umranden des Deckglases mit Deckglaskitt (S. 44).
Nr. 72. Kleine Blutgefäße und Kapillaren. Man ziehe von einem menschlichen Gehirn an der Basis langsam Stückchen Pia von 1-3 cm Seite ab (dabei werden die senkrecht in das Gehirn eindringenden feinen Blutgefäße mit ausgezogen), dann befreie man sie durch Schütteln in destilliertem Wasser von den anhängenden Gehirnmassen und lege sie in 60 ccm Zenkersche Flüssigkeit auf 1 Stunde; hierauf in womöglich fließendes Wasser auch 1 Stunde (Weiterbehandlung siehe S. 16). Betrachtet man ein solches Stückchen in einer Uhrschale auf schwarzem Grunde, so sieht man die feinen Gefäßchen isoliert. a) Mit einer feinen Schere werden kleine Gefäßbäumchen abgeschnitten, 2-5 Minuten in Hansenschem Hämatoxylin gefärbt (S. 32) und in Xylolbalsam (S. 45) eingeschlossen. Oft sind die Blutgefäße prall mit Blutzellen gefüllt, welche ein genaues Studium der Gefäßwand erschweren; diesem Übelstand ist durch einstündiges Einlegen der frisch ausgezogenen Blutgefäße in destilliertes Wasser abzuhelfen. Die Blutzellen werden dadurch entfärbt (s. Technik Nr. 62). (Fig. 104). b) von den größeren Stämmchen der Hirngefäße schneide man ein ca. 5 mm langes Stückchen der Länge nach auf, färbe es in Hansenschem Hämatoxylin und lege es so auf den Objektträger, daß die Externaseite auf dem Glase aufliegt. Konservieren in Xylolbalsam. Man kann durch wechselnde Einstellung des Tubus sehr schön die drei Schichten mit deren Verlaufsrichtung sehen.
Kapillaren findet man auch bei der Untersuchung frischen Gehirns. Man erkennt sie an den parallel verlaufenden Konturen und den ovalen Epithel-(Endothel-)kernen; ferner auch an anderen Präparaten.
Nr. 73. Gefäßepithel(-endothel). Man töte ein Kaninchen durch Halsabschneiden, öffne mit der Schere den Bauch durch einen Kreuzschnitt und schiebe unter das Mesenterium, ohne dasselbe mit dem Finger viel zu berühren, einen Korkrahmen von ca. 2 cm Seite, spanne es mit einigen Igelstacheln glatt auf, schneide es rings um den Rahmen ab und lege das aufgespannte Stück in 20-30 ccm der 1%igen Silberlösung (24, S. 6). Weitere Behandlung siehe E S. 40. Nach erfolgter Bräunung wird das Ganze in ca. 50 ccm 70%igen Alkohol übertragen (die Haut muß in den Alkohol tauchen); nach einer halben Stunde schneide man mit einer Schere Stücke von 5-10 mm Seite aus, und konserviere in Xylolbalsam nach § 10,3 (S. 45). Man vergesse nicht, daß man keine Schnitte, sondern wie in Nr. 72 das ganze Gefäß vor sich hat, so daß nur die richtige Einstellung auf die Fläche des Gefäßes ein Bild wie Fig. 105 ergibt.
Nr. 74. Elastische Fasern der Blutgefäße. Man färbe Schnitte nach Nr. 75 in absolutem Alkohol fixierter Objekte mit Boraxkarmin und Resorzin-Fuchsin (C S. 35) und konserviere in Xylolbalsam (S. 45).
Nr. 75. Herz und größere Blutgefäße. Man schneide einen Papillarmuskel oder von den mm. pectinati aus einem menschlichen Herzen, ein Stück der Aorta von 2 cm Seite und ein 1 cm langes Stück der Vena renalis aus, binde ein 1-3 cm langes Stück der Arteria brachialis mitsamt Venen und umgebendem Bindegewebe nach der Nr. 60 (S. 150) angegebenen Methode auf ein Hölzchen und fixiere die Teile in ca. 40 ccm absolutem Alkohol (S. 14). Nach 24-48 Stunden sind sämtliche Objekte schnittfähig. Man bette in Zelloidin ein und fertige feine Querschnitte an, die mit Hansenschem Hämatoxylin 2-5 Minuten lang gefärbt (S. 32) werden. Einschluß in Xylolbalsam (S. 45; Fig. 106, 108, 109). Elastische Fasern bleiben ungefärbt, können jedoch, oft erst mit starken Vergrößerungen, deutlich erkannt werden.
Querschnitte geben über den Verlauf der Adventitiaelemente ungenügenden Aufschluß. Oft sieht es aus, als ob sämtliche Adventitiaelemente zirkulär angeordnet seien. Die wahre Anordnung kann erst mit Zuhilfenahme von Längsschnitten, welche auch die Muskelfasern der Externa deutlich zeigen, erkannt werden. Sehr zu empfehlen ist auch die Fixierung in Sublimat und Färbung feiner Schnitte nach van Giesons Methode (S. 42).
Nr. 76. Lymphgefäße. Zum Studium der Wandung größerer Lymphgefäße wähle man die in die Inguinalknoten einmündenden Lymphgefäße, die groß genug sind, um mit Messer und Pinzette herauspräpariert zu werden. Behandlung wie größere Blutgefäße Nr. 75 oder Nr. 72b.
Nr. 77. Bezüglich der Darstellung feiner Lymphgefäße, ihres Verlaufes und ihrer Anordnung bedient man sich oft der Injektion durch Einstich, d. h. man stößt die Nadel einer mit Berlinerblau gefüllten Pravazschen Spritze in das betreffende Gewebe und injiziert; eine rohe Methode, deren Resultate sehr zweifelhaften Wert besitzen. Wenn es auch hier und da gelingt, wirkliche Lymphgefäße dadurch zu füllen, wird doch in vielen anderen Fällen die Injektionsmasse mit dieser Methode einfach gewaltsam zwischen die Spalten des Bindegewebes getrieben. Daraus ergibt sich von selbst, welche Beurteilung die so dargestellten „Lymphräume“ und „Lymphgefäßwurzeln“ verdienen.
Nr. 78. Zu Übersichtsbildern der Lymphknoten sind die im Mesenterium gelegenen Lymphknoten junger Katzen am geeignetsten. Man fixiere und härte einen solchen Knoten in ca. 30 ccm absolutem Alkohol; nach 3 Tagen lassen sich leicht feine Schnitte anfertigen, die so gelegt sein müssen, daß sie den makroskopisch an einer Einsenkung leicht kenntlichen Hilus treffen. Längsgerichtete, beide Pole des Knotens treffende Schnitte sind die besten, doch sind auch Querschnitte brauchbar. 6-8 Schnitte werden in Hansenschem Hämatoxylin (2-3 Minuten), dann in Eosin (höchstens 1 Minute) gefärbt (S. 41, G), dann in ein zur Hälfte mit destilliertem Wasser gefülltes Reagenzgläschen gebracht und 3-5 Minuten lang geschüttelt. Gießt man die geschüttelten Schnitte in eine flache Schale, so kann man schon makroskopisch Rinde und Mark unterscheiden; erstere ist gleichmäßig blau, letzteres ist gefleckt. Konservieren in Xylolbalsam (S. 45). Die Trabekel sind nur wenig entwickelt. Man verwechsle nicht die den Knoten aufsitzenden Reste von Fett mit retikulärem Gewebe. Starke Vergrößerungen bieten keinerlei Vorteil; es verschwinden nur die scharfen Konturen, das Bild verliert an Deutlichkeit.
Nr. 79. Der Bau der Lymphknoten älterer Tiere und des Menschen ist oft schwer verständlich, da die ganze Rinde in eine zusammenhängende Masse verwandelt ist, in die unregelmäßig Keimzentra eingestreut sind, doch geben feine Schnitte kleiner, in Zenkerscher Flüssigkeit fixierter (S. 16) und in allmählich verstärktem Alkohol gehärteter Drüsen, die nach van Gieson (S. 42, 18) gefärbt werden, gute Übersichtsbilder (Fig. 114), Durch Schütteln kommen die Lymphsinus der Follikel nur undeutlich zum Vorschein, die Keimzentra fallen gern aus und erscheinen, schon makroskopisch erkennbar, als runde Lücken.
Nr. 80. Zur Darstellung des Netzes der Markstränge und Trabekel eignen sich sehr gut die mesenterialen Lymphknoten des Rindes. Man lege 2 cm lange Stücke derselben in 200 ccm konzentrierte wässerige Pikrinsäurelösung und versuche nach 24 Stunden mit scharfem, mit Wasser benetztem Messer feine Schnitte anzufertigen. Das gelingt freilich nicht so gut wie nach Alkoholfixierung, allein selbst etwas dickere Schnitte sind noch brauchbar. Die Schnitte werden auf 1 Stunde in 100 ccm öfters zu wechselndes destilliertes Wasser gebracht, dann mit Hansenschem Hämatoxylin und Eosin gefärbt und geschüttelt (s. Nr. 78). Einschluß in Xylolbalsam (S. 45). Die Balken sind rot, die Markstränge blau; bei schwachen Vergrößerungen sieht man Bilder wie Fig. 116, bei starken Vergrößerungen sehr schön das retikuläre Bindegewebe der Lymphsinus; die in dessen Maschen befindlich gewesenen Leukozyten sind durch die Pikrinsäurebehandlung gelockert und durch Schütteln meist entfernt worden (Fig. 117).
Nr. 81. Blutlymphknoten, makroskopisch den Lymphknoten ähnliche Gebilde von dunkelroter Farbe, finden sich in individuell sehr wechselnder Zahl längs der Vorderfläche der Wirbelsäule, am Ursprung der A. mesent. sup. und der A. renalis. Beim Menschen von der Größe eines Stecknadelkopfes bis zu der einer Mandel sind sie am besten an Eingeweiden zu finden, die in 4%iger Formollösung fixiert waren. Dadurch werden die Knoten dunkelbraun gefärbt und treten schärfer hervor. Am leichtesten sind sie beim Schwein längs der Brustaorta, beim Schaf in der Bauchhöhle zu finden, fehlen aber auch zuweilen da. Technik wie Nr. 79.
Nr. 82. Elemente der Milz. Man durchschneide eine frische Milz, streiche mit schräg aufgesetztem Skalpell über die Schnittfläche und untersuche die der Skalpellklinge anhaftende rote Masse in einem Tropfen Kochsalzlösung. Starke Vergrößerung! Man findet (besonders bei Tieren) oft nur rote und weiße Blutzellen, letztere enthalten zum Teil kleine Körnchen. Bei menschlichen Milzen sind neben zahlreichen, in ihrer Gestalt veränderten farbigen Blutzellen (Fig. 121) stets die früher sogenannten Milzfasern, das sind Epithel-(Endothel-)zellen der Milzsinus, zu finden. Erythrozytenhaltige Zellen und mehrkernige Zellen sucht man in menschlichen Milzen oft vergebens.
Nr. 83. Milz. Man fixiere die ganze Milz, ohne sie anzuschneiden, in Müllerscher Flüssigkeit. (Bei menschlicher Milz 1 Liter, bei Katzenmilz 200-300 ccm.) Nach 2 (bei Tieren) bis 5 (beim Menschen) Wochen wasche man die Milz 1-2 Stunden in womöglich fließendem Wasser, schneide Stücke von ca. 2 cm Seite aus und härte sie in ca. 60 ccm allmählich verstärktem Alkohol (S. 17). Einbetten in Zelloidin oder Paraffin. Man sieht auf der Schnittfläche die Milzknötchen schon mit unbewaffnetem Auge. Nicht zu feine Schnitte färbe man mit Hansenschem Hämatoxylin (S. 32) und konserviere sie in Xylolbalsam (S. 45). Will man die Balken färben, so lege man die mit Hämatoxylin gefärbten Schnitte 1/2 Minute[98] in Eosin (S. 41). Bei gelungenen Präparaten erscheinen die Pulpastränge und die Knötchen blau, die Balken rosa, die mit Blutzellen strotzend gefüllten Gefäße braun. Möglichst schwache Vergrößerungen liefern die besten Bilder (Fig. 118), bei stärkeren Vergrößerungen sind die so scharf gewesenen Konturen oft undeutlich. Für feine Schnitte ist Fixierung in Zenkerscher Flüssigkeit usw. (S. 16) und Färbung nach van Gieson (S. 42, 18) zu empfehlen (Fig. 122).
Nr. 84. Zur Darstellung des retikulären Bindegewebes der Milz sei Studničkas Modifikation (S. 39) empfohlen.
Nr. 85. Blutgefäße der Milz erhält man gelegentlich der Injektion des Magens und des Darmes, vgl. Nr. 134.
Nr. 86. Nerven der Milz. Am besten geeignet ist die Milz der Maus, die halbiert nach Golgis Methode (S. 36) behandelt wird; 3 Tage Aufenthalt in der osmiobichromischen Mischung (in der Wärme) und ebenso lange in der Silberlösung genügt zuweilen; oft führt erst einmalige oder doppelte Wiederholung des Verfahrens zu guten Resultaten.
II. Bewegungsapparat.
Hierunter rechnen wir Gebilde, die zur Gestaltsveränderung des ganzen Körpers dienen.
Nicht behandelt sind in diesem Abschnitt die Bewegungseinrichtungen im größten Teile des Eingeweideapparates.
Zum Bewegungsapparat sind in inniger Vereinigung Muskeln, Sehnen, lockeres Bindegewebe, Knorpel, Knochen und manche Hilfseinrichtungen zusammengeschlossen; Blutgefäße und Nerven nehmen an der Zusammensetzung und Funktion reichlichen Anteil. Wir unterscheiden als aktiven Teil 1. das Muskelsystem mit seinen Hilfseinrichtungen, als passiven Teil 2. das Skelettsystem.
1. Das Muskelsystem.
Das Muskelsystem setzt sich zusammen aus einer großen Anzahl kontraktiler Organe, den Muskeln, welche, aus quergestreiftem Muskelgewebe bestehend, meist durch Vermittlung besonderer bindegewebiger Formationen, der Sehnen, mit dem Skelett, mit der Haut, mit den Eingeweiden usw. in Verbindung treten. Dazu kommen noch gleichfalls bindegewebige Hilfsapparate, wie die Faszien, Sehnenscheiden und Schleimbeutel.
Muskeln. Jeder Muskel besteht aus quergestreiften Muskelfasern (S. 124), die in der Regel derart miteinander verbunden sind, daß sie sich der Länge nach neben- und hintereinander legen und durch lockeres Bindegewebe, das Perimysium, zusammengehalten werden; quere Durchflechtungen kommen nur selten (z. B. in der Zunge) vor. Niemals berühren sich benachbarte Muskelfasern mit ihrem Sarkolemm direkt, sondern jede einzelne Muskelfaser ist von einer zarten bindegewebigen Hülle, dem Perimysium der einzelnen Muskelfaser (Fig. 125) umgeben, welches mit den Nachbarhüllen zusammenhängt.
Indem eine sehr verschieden große Anzahl von Fasern durch eine etwas dickere Bindegewebshülle (Perimysium internum) umfaßt wird, kommt es zur Bildung eines Muskelbündels (Fig. 124). Eine Summe von Muskelbündeln bildet alsdann einen Muskel, der an seiner Oberfläche von einer noch dickeren Bindegewebshülle, dem Perimysium externum, umgeben wird. Sämtliche Perimysien hängen unter sich zusammen.
Die Einteilung in sekundäre Bündel, die in einer gewissen Anzahl tertiäre Bündel bilden, aus deren Vereinigung endlich ein Muskel sich aufbauen soll, ist eine durchaus willkürliche und läßt sich an vielen Präparaten gar nicht erkennen.
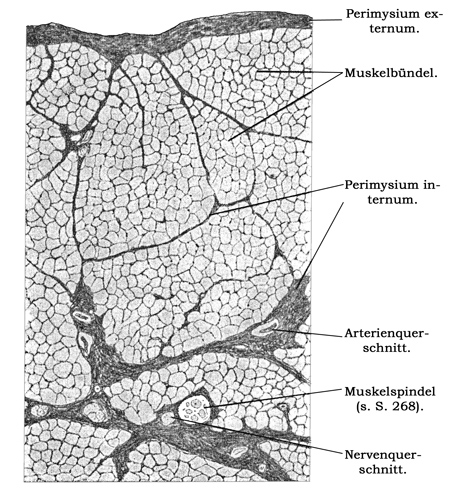
Fig. 124.
Stück eines Querschnittes des M. omohyoideus des Menschen. 60mal vergr. Technik Nr. 87, S. 205.
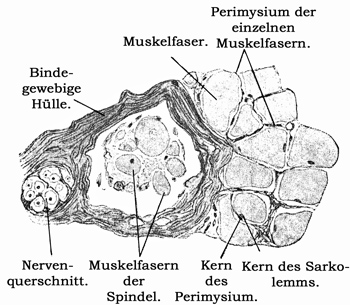
Fig. 125.
Stück des Schnittes der Fig. 124. 240mal vergr.
Das Perimysium besteht aus fibrillärem Bindegewebe, feinen, hauptsächlich längsverlaufenden, elastischen Fasern, enthält zuweilen Fettzellen und ist der Träger der Nerven-, Blut- und Lymphgefäße. Im Perimysium der einzelnen Muskelfasern sind nur Kapillaren und die Endäste der Nerven enthalten.
Im Perimysium externum sind elastische Fasern besonders reichlich vorhanden; die Extremitätenmuskeln sind arm, das Zwerchfell ist reich an elastischen Fasern.
Das Perimysium dient in seiner Gesamtheit also der Ernährung und der Innervation der einzelnen Muskelfasern; darüber hinaus besitzt es aber auch eine wichtige mechanische Bedeutung: das von kollagenen Querfasern verstärkte Perimysium der einzelnen Muskelfaser verhindert eine zu starke Verdickung der einzelnen Faser und bildet damit ein Widerlager für die sich kontrahierende Muskelfaser; die meist längsverlaufenden, elastischen Fasern erleichtern die Verkürzung gedehnter Muskelfasern, ersparen also den letzteren Kraft.
Bindegewebe ist es endlich, das stets die Übertragung der Muskelkraft auf die zu bewegenden Teile (Knorpel, Knochen, Weichteile) übernimmt.
Sehnen. Die Verbindung der Muskeln mit den Sehnen ist außerordentlich fest; Einrisse kommen im Leben wohl innerhalb der Muskelfasern vor, niemals aber, soviel wir wissen, an der Verbindungsstelle von Muskel und Sehne.
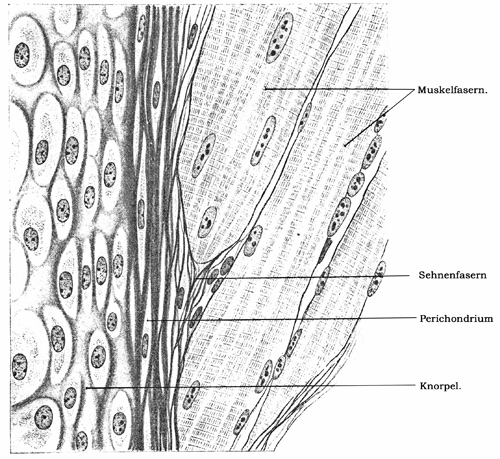
Fig. 126.
Ansatz von Muskelfasern am Perichondrium; aus einem dünnen Schnitt durch Rippe und Interkostalmuskeln einer jungen Maus. 750mal vergrößert. Technik Nr. 89, S. 206.
Die Art dieser Verbindung ist noch nicht einwandsfrei festgestellt; von manchen Autoren wird ein unmittelbarer Übergang der Muskelfibrillen in die Sehnenfibrillen angenommen, andere erkennen die Beweiskraft dieser Präparate nicht an. Sicher besteht aber außerdem eine feste Verbindung der Sehnen mit den Muskelfasern durch Vermittlung von Sehnenfibrillen, die wie ein Korb das abgerundete Ende der Muskelfasern umgeben und in das Sarkolemm, zum Teil auch in das Perimysium der einzelnen Muskelfaser übergehen (Fig. 126). Beim Ausstrahlen quergestreifter Muskelfasern in Haut oder Schleimhaut stehen diese durch zugespitzte oder geteilte Enden mit Sehnen in Verbindung, die entweder ganz oder teilweise aus elastischen Fasern bestehen. Solche elastische Sehnen üben im Bindegewebe ausstrahlend eine schwache, aber gleichmäßige Wirkung auf die Bewegung der Oberfläche aus.
Längere Sehnen (besonders diejenigen der Extremitätenmuskeln) haben einen ähnlichen Gesamtaufbau wie die Muskeln.
Der Querschnitt der ganzen Sehne, sowie derjenige einzelner Bündel ist stets beträchtlich kleiner wie derjenige der zugehörigen Muskelteile. Ein Peritenonium internum umschließt die einzelnen Sehnenbündel, ein Peritenonium externum die ganze Sehne.
Die Faszien zeigen zum Teil den gleichen Bau wie die Sehnen, zum Teil sind sie mit elastischen Fasern reichlich versehene, bindegewebige Häute; letzteres ist der Fall da, wo die Faszien nur Hüllen um die Muskeln, nicht aber Ansatzflächen für Muskelfasern bilden.
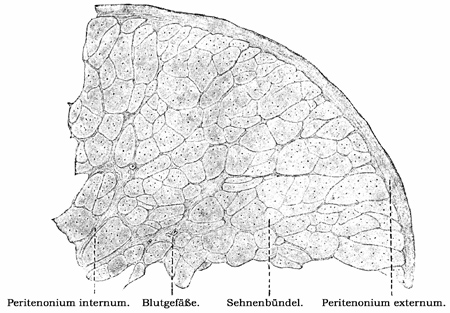
Fig. 127.
Stück eines Querschnittes einer Sehne eines erwachsenen Menschen. 40mal vergrößert. Die dunklen Punkte in den Sehnenbündeln sind Bindegewebszellen. Technik Nr. 88, S. 205.
Die als Gleiteinrichtungen anzusehenden Schleimbeutel und Sehnenscheiden sind im Perimysium bzw. Peritenonium sekundär entstandene Lücken, die mit einer geringen Menge klarer Flüssigkeit angefüllt sind. Ihre Wand besteht aus einer verschieden dicken Lage von Bindegewebe mit elastischen Fasern, dessen Innenfläche stellenweise von einem meist einfachen Plattenepithel („Endothel“) überkleidet wird. Wo das Endothel fehlt, ist das Bindegewebe derb und reich an rundlichen, den Knorpelzellen ähnlichen Elementen. In den meisten Sehnenscheiden kommen kleine, den Synovialzotten vollkommen gleichende, blutgefäßführende Fortsätze vor.
Diese reichen bei den oft sehr langen Sehnenscheiden von der Außenfläche der Wandung bis an die Sehnenoberfläche und enthalten die sehr feinen zur Versorgung der Sehne notwendigen Blutgefäße.
Die Blutgefäße der quergestreiften Muskeln sind sehr zahlreich und gleichmäßig verteilt, die Kapillaren gehören zu den feinsten des menschlichen Körpers und bilden ein den Muskelfasern dicht anliegendes Netz langgestreckt rechteckiger Maschen; die Venen sind bis in die feinsten Ästchen mit Klappen versehen. Die spärlichen Lymphgefäße verlaufen mit den Verästelungen der kleinen Blutgefäße.
Über die teils sensiblen, teils motorischen Nerven der quergestreiften Muskeln sowie über die Muskelspindeln s. bei Nervenendigungen.
Die Blutgefäße der Sehnen und der schwächeren Faszien sind sehr spärlich und nur in dem lockeren, die Sehnenbündel umhüllenden Bindegewebe enthalten; die Sehnenscheiden dagegen und die Schleimbeutel sind reich an Blutgefäßen. Lymphgefäße finden sich nur an der Oberfläche der Sehnen.
Die markhaltigen Nerven der Sehnen laufen zum Teil in ein dichtes Netz markloser Nervenfasern aus, zum Teil aber gehen sie meist in spindelförmige Auftreibungen der Sehnen, in die sogenannten „Sehnenspindeln“ über (s. S. 268). Auch Endkolben und Lamellenkörperchen (s. S. 266) finden sich in Perimysien, Sehnen, Faszien und Sehnenscheiden.
Technik.
Nr. 87. Bündel quergestreifter Muskeln. Man mache mit einem scharfen Rasiermesser in einen parallelfaserigen Muskel (z. B. in einen Adduktor des Kaninchens) einen tiefen, quer zum Faserverlauf gerichteten Einschnitt und 2-3 cm abwärts von diesem einen zweiten Schnitt, verbinde beide durch Längsschnitte und präpariere, ohne zu zerren, das so umschriebene Stück vorsichtig heraus. Fixieren in 100 ccm Kalibichromat-Essigsäure (s. weiter S. 15). Querschnitte ungefärbt in verdünntem Glyzerin betrachten. Man sieht sehr verschieden dicke Muskelfasern; die ganz dünnen sind querdurchschnittene Enden. Obwohl die Muskelfasern zylindrisch sind, also im Durchschnitte rund sein sollen, erscheinen sie hier durch gegenseitigen Druck unregelmäßig polygonal. Das Perimysium der einzelnen Muskelfasern ist besser bei starken Vergrößerungen (240mal) und Färbung nach van Gieson (S. 42), die Cohnheimschen Felder (Fig. 80, S. 128) nur an dünnen Mikrotomquerschnitten zu sehen. Muskelspindeln lassen sich leicht an den Querschnitten des menschlichen M. omohyoideus finden (Fig. 124).