II. Abschnitt. Mikroskopische Anatomie und spezielle Technik. (continued 5)
Reading edition
Die sympathischen Ganglien enthalten außer diesen nervösen Zellen noch chromaffine Zellen (siehe S. 262) und viele verzweigte mit langen Ausläufern versehene Zellen (Fig. 167), die meist an die Wand der Blut- und Lymphgefäße angeschmiegt sind; solche Zellen finden sich auch an vielen anderen Stellen des Körpers, z. B. in Darmzotten, Drüsen, in der Zunge und sind wahrscheinlich bindegewebiger Natur.
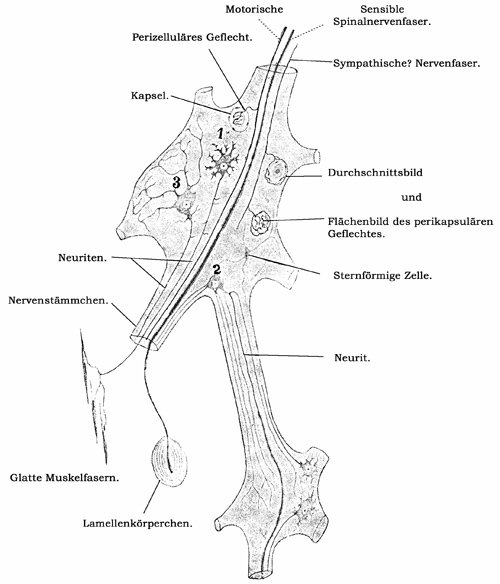
Fig. 167.
Schema der Elemente zweier sympathischer Ganglien; nach Präparaten, die mit Methylenblau (7, S. 36) hergestellt sind. 1, 2, 3 Zellen des ersten, zweiten, dritten Typus.
Das Zytoplasma der sympathischen Ganglienzellen enthält oft Pigmenteinlagerungen, entspricht im übrigen dem Bau anderer Nervenzellen; in beim Menschen seltenen Fällen besitzt eine Zelle zwei Kerne; bei manchen Tieren (Kaninchen, Meerschweinchen) ist die Mehrzahl der sympathischen Ganglienzellen zweikernig.
An Nervenfasern findet man in sympathischen Ganglien:
a) Spinale Nervenfasern, markhaltige, die einfach das Ganglion passieren oder nach Verlust ihrer Markscheide mit relativ grober Endverästlung ein perizelluläres Geflecht um die Zellen (wahrscheinlich des I. Typus) bilden. Ebenso verhalten sich Kollateralen solcher Nerven (Fig. 167). Auch sensible, von Endapparaten (Lamellenkörperchen S. 266) herkommende Nervenfasern ziehen durch die Ganglien (Fig. 167).
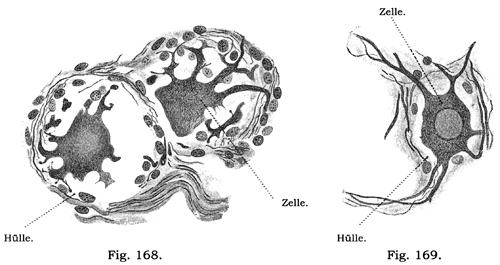
Fig. 168. Fig. 169.
Aus einem Schnitt durch das Ganglion ciliare und des Ganglion cervicale supremum des erwachsenen Menschen. 465mal vergr. Nach Präparaten von L. R. Müller (Erlangen) nach Technik 9, S. 38. Links sind die Kerne der Ganglienzellen unsichtbar.
b) Marklose Nervenfasern, die mit ihren feinen, varikösen Endverästlungen ein perikapsuläres Geflecht bilden. Es wird vermutet, daß diese Fasern sympathischer Natur sind.
Im Anschluß an die Ganglien sind die Paraganglien zu betrachten, Ballen oder Stränge von Zellen, die aus embryonalen Anlagen der sympathischen Ganglien stammen und sich dadurch auszeichnen, daß sie sich bei Fixierung mit Chromsäure- oder Chromsalzlösungen gelbbraun färben. Die Zellen werden deshalb auch chromaffine Zellen genannt. Die Paraganglien finden sich in engerem oder loserem Zusammenhang mit dem Sympathikus und liegen in letzterem Falle an den großen Gefäßen, bei Feten zwischen den Ästen der Vasa spermatica, am Paroophoron und an der Paradidymis; auch die von Zuckerkandl entdeckten, makroskopisch darstellbaren, sympathischen Nebenorgane am Ursprung der A. mesenterica inferior gehören hierher. Einzelne chromaffine Zellen oder kleinere Gruppen solcher finden sich auch als diffuse Einlagerungen mitten in sympathischen Ganglien und Nerven. Endlich besteht die ganze Marksubstanz der Nebenniere der höheren Wirbeltiere aus chromaffinen Zellen. Da bei intravenösen Injektionen von Extrakten chromaffinen Gewebes eine starke Erhöhung des Blutdruckes erfolgt, so glaubt man, daß die chromaffinen Zellen spezifische Stoffe (sogenanntes Adrenalin) an den Kreislauf abgeben, welche den Gefäßtonus auf normaler Höhe zu erhalten bestimmt sind (siehe auch bei Nebenniere, S. 287).
Periphere Nervenendigungen.
Endigungen der sensiblen Nerven.
Die peripheren Endäste der sensiblen Nerven laufen entweder nackt aus — freie Nervenendigungen — oder sie werden von Epithel- oder Bindegewebszellen umfaßt, die mit der Nervenendigung zusammen das Terminalkörperchen bilden[106].
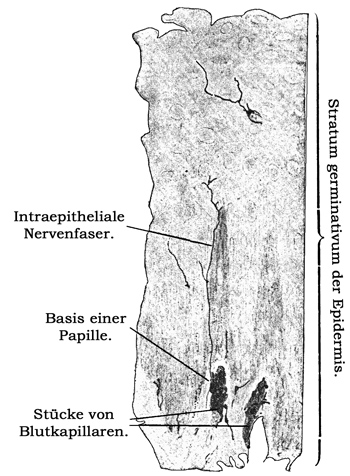
Fig. 170.
Stücke eines senkrechten Schnittes durch die Haut der großen Zehe eines 25jähr. Mannes. 360mal vergrößert. Technik Nr. 106, S. 274. Die Papillen sind nur an ihrer Basis angeschnitten, das ihnen aufsitzende Epithel ist schräg getroffen und darum wenig deutlich.
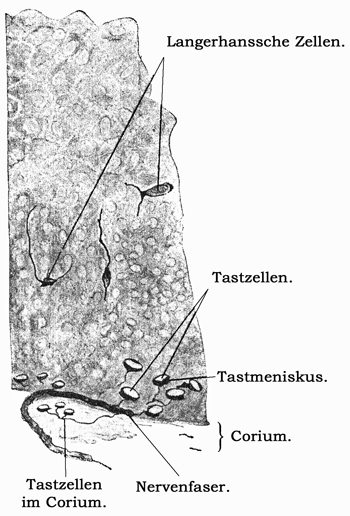
Fig. 171.
Stück eines senkrechten Schnittes durch die Haut der großen Zehe eines 25jährigen Mannes. 360mal vergr. Technik Nr. 106, S. 274.
Die freien Nervenendigungen finden sich im Bindegewebe, im Epithel und in den Muskeln.
Im Bindegewebe erscheinen sie als büschelige, oft langgestreckte Geflechte und Knäuel, die durch wiederholte Teilung einer marklos werdenden Nervenfaser entstanden sind. Derartige Bildungen kommen in der äußeren Haut, allein oder neben Terminalkörperchen vor.
Die im Epithel frei endenden Nervenfasern teilen sich nach Verlust ihrer Markscheide vor dem Eintritt ins Epithel wiederholt und laufen, ein Geflecht bildend, als nackte Achsenzylinder in feine Spitzen aus oder enden mit einer knopfförmigen Anschwellung. Hier sind schleifenförmige Umbiegungen und Netze der Fibrillen der Achsenzylinder (S. 144) beobachtet worden. Derartige Endigungen kommen vorzugsweise im geschichteten Epithel vor (Fig. 169). Sie sind mit Sicherheit im Hornhautepithel (s. Kap. Sehorgan) gefunden worden, ferner in der Schleimhaut der Mundhöhle (s. Kap. Geschmacksorgan) und im Stratum germinativum der Epidermis. In letzterem sieht man auch mit langen, verästelten Ausläufern versehene Zellen, die Langerhansschen Zellen (Fig. 171); dieselben wurden früher für aus dem Korium eingedrungene Wanderzellen (S. 93) gehalten und es ist möglich, daß einzelne derselben wirklich einen derartigen Ursprung haben; die Mehrzahl aber sind Umbildungen untergehender gewöhnlicher Epithelzellen, denn man findet alle Übergangsformen von typischen Epithelzellen zu jenen Sternformen.
Die in den Muskeln frei endenden sensiblen Nerven gehen baumförmig sich verästelnd in viele marklose, mit einem Neurilemm versehene Fasern über und enden fein langgestreckt zwischen den Muskelfasern frei aus (Fig. 177).
Die Terminalkörperchen zerfallen in zwei Hauptarten, in Tastzellen und Endkolben. Bei den Tastzellen findet die Nervenendigung an einer oder zwischen zwei Zellen statt, bei den Endkolben dagegen im Innern eines feinkörnigen Körpers, des sogenannten Innenkolbens.
1. Tastzellen.
Wir unterscheiden: a) einfache Tastzellen, das sind ovale, kernhaltige, 6-12 µ große Zellen (Fig. 171), welche entweder in den tiefsten Schichten der Epidermis und der äußeren Wurzelscheide der Haare oder in den angrenzenden Partien des Korium gelegen sind. Marklose Nervenfasern legen sich mit einer schalenförmigen Verbreiterung, dem Tastmeniskus (Tastscheibe), an die Oberfläche der Tastzellen, welche von anderen Nervenfasern mit einem feinen, perizellulären Netze umsponnen werden. Die Tastmenisken selbst enthalten ein dichtes Netz feiner Nervenfibrillen.
b) Zusammengesetzte Tastzellen (Grandrysche, Merkelsche Körperchen); sie bestehen aus zwei oder mehreren kuchenförmigen Zellen, deren jede, größer wie die einfachen Tastzellen, 15 µ hoch und 50 µ breit ist und einen bläschenförmigen Kern enthält. Eine markhaltige Nervenfaser tritt zwischen zwei gegeneinander abgeplattete Tastzellen und wird an der Eintrittsstelle marklos, die bindegewebige Fibrillenscheide setzt sich in die bindegewebige Umhüllung der zusammengesetzten Tastzelle fort.
Der Achsenzylinder selbst umfaßt mit gablig geteilten Ästen eine flache, zwischen den Tastzellen gelegene Masse, die Tastscheibe, und bildet mit seinen auseinander fahrenden Fibrillen ein geschlossenes Netz. Ein Zusammenhang zwischen Tastzellen und Tastscheiben, ein Übergang von Nervenfasern in das Zytoplasma der Tastzellen wird in Abrede gestellt.
Die aus zwei Tastzellen bestehenden Gebilde heißen Zwillingstastzellen, die aus mehreren, drei oder vier Tastzellen aufgebauten wurden „einfache Tastkörperchen“ genannt.
Die zusammengesetzten Tastzellen sind bis jetzt nur in der Haut des Schnabels, sowie in der Zunge der Vögel, besonders der Schwimmvögel, gefunden worden; sie haben ihren Sitz fast ausschließlich in den höchsten Schichten des Korium.
c) Die Tastkörperchen (Wagnersche, Meißnersche Körperchen) sind elliptische, 40-100 µ lange, 30-60 µ breite Gebilde, welche durch eine quere Streifung charakterisiert sind. Diese wird bedingt durch quergestellte, abgeplattete Zellen, welche von einer bindegewebigen Hülle umfaßt werden. An jedes Tastkörperchen treten eine bis fünf markhaltige Nervenfasern, welche in quergestellten Touren den unteren Pol des Tastkörperchens umkreisen, dann ihre Fibrillenscheide und ihr Neurilemm an die Hülle abgeben, ihr Mark verlieren und als nackte, vielfach geteilte Achsenzylinder sich an die Tastzellen mit Verbreiterungen anlegen, in denen Netze von Neurofibrillen bemerkbar sind. Wie bei den Lamellenkörperchen (siehe unten) finden sich auch hier feine Endverästelungen eines zweiten dünnen, Achsenzylinders. Die Tastkörperchen liegen in den Koriumpapillen und werden vorzugsweise an der Hohlhand (23 auf 1 qmm), an den Fingerspitzen und an der Fußsohle gefunden.
Ähnlich gebaut sind die in der Papillenbasis der menschlichen Haut vorkommenden, langzylindrischen „Dogielschen Körperchen“.
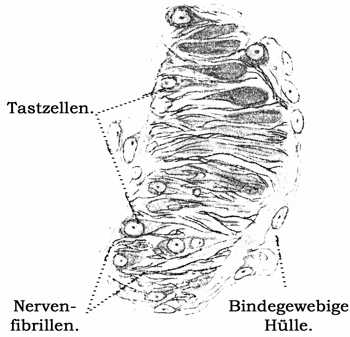
Fig. 172.
Tastkörperchen aus einem Schnitt der menschlichen Fingerhaut. Technik nach Bielschowsky (siehe 9, S. 38). 500mal vergr. Präp. von van der Velde.
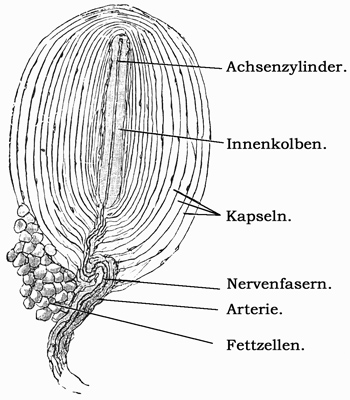
Fig. 173.
Kleines Lamellenkörperchen aus dem Mesenterium einer Katze. 50mal vergr. Die zwischen den Kapseln gelegenen Zellen sind an ihren dunkelgezeichneten Kernen zu erkennen. Man sieht das Nervenmark bis zum Innenkolben reichen. Technik Nr. 107, S. 274.
2. Endkolben.
Die Endkolben sind rundliche oder ovale Körper, in deren Inneres sich Nervenfasern einsenken und dort bald einfach, bald verästelt enden. Es gibt verschiedene Formen von Endkolben:
a) die sogenannten zylindrischen Endkolben, die einfachste Form, bestehen zum großen Teil aus einer modifizierten Fortsetzung der eintretenden Nervenfaser: 1. aus einer durch platte Bindegewebszellen hergestellten Hülle, der Fortsetzung der Fibrillenscheide (S. 254); 2. aus dem Innenkolben, einer feinkörnigen Masse, welche konzentrische Schichtung zeigt und an der Peripherie spärliche Kerne aufweist; 3. aus dem Achsenzylinder; die Nervenfaser verliert beim Eintritt in den Innenkolben ihr Mark, ihr Achsenzylinder steigt jedoch als ein plattes Band in demselben in die Höhe und endet ähnlich jenem der Lamellenkörperchen. Die zylindrischen Endkolben finden sich in der Tunica propria von Schleimhäuten, z. B. in der Conjunctiva bulbi von Säugetieren, in der Schleimhaut der Mundhöhle und im parietalen Bauchfell des Menschen.
b) die Lamellenkörperchen (Vater, Pacini); das sind meist elliptische 0,5-4,5 mm lange, 1-2 mm dicke, durchscheinende Gebilde und bestehen wie die zylindrischen Endkolben aus Hülle, Innenkolben und Achsenzylinder. Die Hülle besteht hier aus einer großen Anzahl ineinander geschachtelter Kapseln, deren jede von ihrer Nachbarin durch eine einfache Lage platter Bindegewebszellen geschieden ist. Jede Kapsel enthält Flüssigkeit und teils längs-, teils querverlaufende Bindegewebsfasern. Wie die Hülle des zylindrischen Endkolbens, so gehen auch die Kapseln aus der Bindegewebsscheide der eintretenden, dicken Nervenfaser hervor. Die Kapseln sind um so schmäler, je näher sie dem Innenkolben liegen. An dem dem Nerveneintritte entgegengesetzten Pole hängen sie nicht selten durch einen in der Richtung des Innenkolbens verlaufenden Strang, das Ligamentum interlamellare zusammen. Der in den kernlosen Innenkolben eintretende dicke Achsenzylinder erscheint an frischen Präparaten als ein bald einfacher, bald am Ende gabelig geteilter Strang, gibt aber, wie gelungene Methylenblaufärbungen zeigen, eine Masse feiner, zu einem langgestreckten Knäuel verbundener Ästchen ab, die den Binnenraum des Innenkolbens fast ganz ausfüllen und von feinen Verästelungen eines zweiten dünnen Achsenzylinders umsponnen werden. Mit der Nervenfaser, in deren Bindegewebsscheide eingeschlossen, tritt auch eine kleine Arterie in das Lamellenkörperchen, welche sich in ein zwischen den Kapseln gelegenes Kapillarnetz auflöst.
Durch Bielschowskys Methode lassen sich im Innenkolben Netze von Nervenfibrillen, dagegen nicht die verknäuelten Ästchen nachweisen, was so gedeutet werden könnte, daß die Fibrillen gar nicht bis zu den letzten Endigungen der Nerven reichen. Damit würde die schon oben (S. 138) bezweifelte Leitungsfähigkeit der Nervenfibrillen noch mehr verdächtigt.
Die Lamellenkörperchen finden sich teils oberflächlich (reichlich im subkutanen Bindegewebe der Vola manus und der Fußsohle, spärlicher an anderen Hautstellen, an der Brustwarze, im Gebiet des Nervus pudendus) teils in der Tiefe (in der Umgebung der Gelenke, an den Periost- und Knochennerven, an Sehnen und deren Scheiden, an Faszien, endlich in der Nachbarschaft des Pankreas, der Tubae uterinae, im Mesenterium, im parietalen Bauchfell und bei Säugetieren in verschiedenen Teilen der männlichen Geschlechtsorgane). Sie vermitteln einfache Druckempfindungen (?).
Die im Bauchfell, in der Haut der Geschlechtsorgane des Menschen und der Conjunctiva, sowie in verschiedenen Höhen des Corium anderer Orte, z. B. in den Papillen der Tastballen der Katze, vorkommenden Golgi-Mazzonischen Körperchen unterscheiden sich von den Lamellenkörperchen im wesentlichen durch ihre geringe Größe und durch ihre schwächer entwickelte Hülle.
Die bei den Vögeln vorkommenden Key-Retziusschen und Herbstschen Körperchen sind ebenfalls Lamellenkörperchen, die sich nur durch ihre viel geringere Größe und durch eine dem Innenkolben entlang ziehende, doppelte Kernreihe auszeichnen.
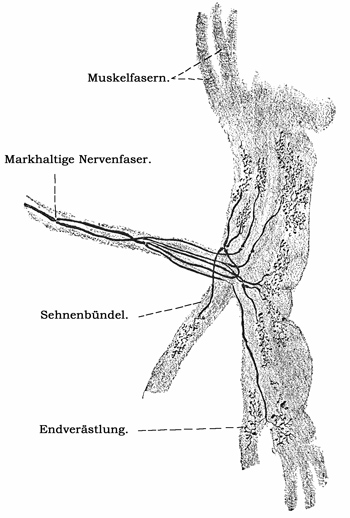
Fig. 174.
Sehnenspindel einer erwachsenen Katze. 80mal vergr. Nach einem Präparat Ruffinis gezeichnet. Technik wie Nr. 108, S. 275.
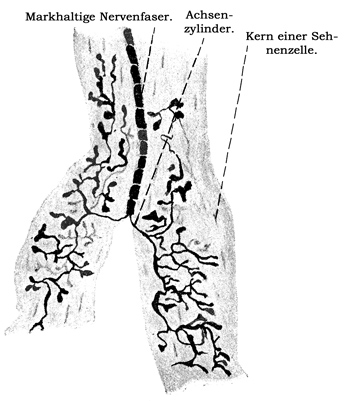
Fig. 175.
Stück des Präparates Nr. 156. 345mal vergrößert.
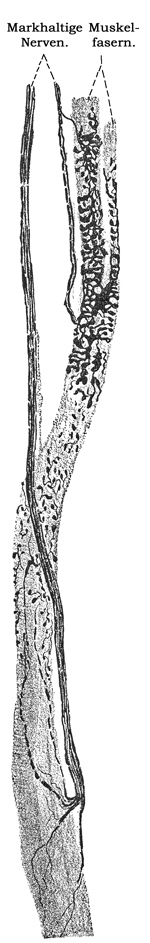
Fig. 176.
Muskelspindel einer erwachsenen Katze. 135mal vergrößert. Technik wie Nr. 108, S. 275.
c) Die Genitalnervenkörperchen der Säugetiere und des Menschen sind ovale oder rundliche, 0,06-0,4 mm lange Gebilde und bestehen aus einem feinkörnigen, kernlosen Innenkolben, der von einer bindegewebigen, mit zytoplasmareichen Zellen versehenen Kapsel umfaßt wird. Die herantretenden markhaltigen Nervenfasern machen eine Anzahl Windungen um das Körperchen, verlieren, sich teilend, ihre Markscheide, während Fibrillenscheide und Neurilemm in die Kapsel übergehen; die nackten Achsenzylinder dringen an verschiedenen Punkten in den Innenkolben und bilden dort sich vielfach teilend ein dichtes Geflecht mit varikösen Anschwellungen. Jedes Geflecht ist mit Geflechten benachbarter Körperchen durch feine Nervenfäden verbunden.
Die Genitalnervenkörperchen liegen in der Tiefe des Korium in verschiedener Entfernung von der Pars papillaris der Haut; in den Papillen selbst kommen nur kleinere, den „kugeligen Endkolben“ gleichende Endapparate vor. In größter Anzahl (1-4 auf 1 qmm) finden sich die Genitalnervenkörperchen in der Glans penis und in der Klitoris. Einen ähnlichen Bau haben die sogenannten „kugligen“ (in Wirklichkeit teils runden, teils ovalen) Endkolben, welche in der Konjunctiva und den angrenzenden Teilen der Hornhaut des Menschen gelegen sind und einen größten Durchmesser von 0,02-0,1 mm besitzen. Auch die Gelenknervenkörperchen gehören in die gleiche Kategorie.
Im Anschluß an die Endkolben sind noch die Sehnen- und Muskelspindeln, sowie die Terminalzylinder Ruffinis zu betrachten.
Die Sehnenspindeln sind meist spindelförmige Auftreibungen von Sehnenbündeln, die von einer gut entwickelten bindegewebigen Hülle umgeben werden. Das eine Ende der Spindel geht in Sehnenbündel über, das andere setzt sich in Muskelfasern fort (Fig. 174). Die an die Mitte herantretenden Nervenfasern teilen sich wiederholt, verlieren ihr Mark und gehen in ein reich entwickeltes Astwerk mit oft keulenförmig angeschwollenen Enden über (Fig. 175). Auch diese enthalten geschlossene Netze von Nervenfibrillen. Die Sehnenspindeln, die beim Menschen in allen Sehnen, aber in wechselnder Menge vorkommen, vermitteln das Gefühl der Dehnung und treten bei koordinierten Bewegungen in Tätigkeit.
Die Muskelspindeln (Muskelknospen) sind Gruppen feiner Muskelfasern, die mit einer dicken Perimysiumhülle umgeben (Fig. 124, S. 202) und mit vielen Kernen ausgestattet sind; die Endverästlungen der an sie herantretenden Nerven sind entweder in Form von Spiralen und Ringen (Fig. 176 oben) oder von blütenartigen Verzweigungen mit kolbigen Enden (Fig. 176 unten) angeordnet. Die Muskelspindeln liegen mehr im Bauch als in den Enden der Muskeln und fehlen den Muskeln des Auges, des Rachens, des Ösophagus, des Kehlkopfes, dem M. ischio- und bulbocavernosus, dem Zwerchfell und den mimischen Gesichtsmuskeln; sie sollen auf den Druck reagieren, der durch die Kontraktion der benachbarten Muskelfasern ausgeübt wird.
Die sowohl im Stratum subcutaneum in der Gegend der Knäueldrüsenkörper, als auch in der Lederhaut der Finger und Zehen vorkommenden Terminalzylinder ähneln in ihrer Endverästlung derjenigen der Sehnenspindeln.
Endigung der motorischen Nerven.
Die an die quergestreiften Muskeln herantretenden Nervenstämmchen zerfallen in Äste, diese wieder in Zweige, die miteinander anastomosierend ein Geflecht, den intermuskulären Nervenplexus, bilden. Im Bereich dieses Plexus finden viele Teilungen der markhaltigen Nervenfasern statt, so daß die Summe der Nervenfasern hier beträchtlich vermehrt wird. Von den Zweigen (Nervenfaserbündeln) entspringen feine, aus einer Nervenfaser bestehende Ästchen, die sich endlich mit je einer Muskelfaser verbinden.
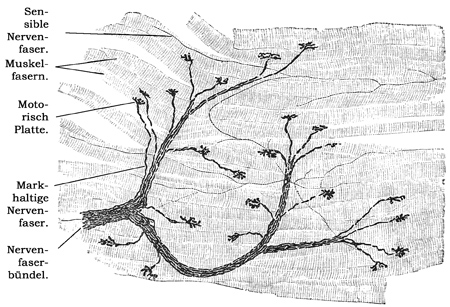
Fig. 177.
Motorische Nervenendigungen an Interkostalmuskelfasern eines Kaninchens. 150mal vergrößert. Technik Nr. 108, S. 275.
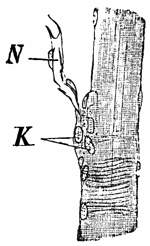
Fig. 178.
Motorische Nervenendigung an einer Augenmuskelfaser des Kaninchens. 240mal vergrößert. N Markhaltige Nervenfaser. K Kerne d. Scheibe. Die Querstreifung der Muskelfaser ist nur in der unteren Hälfte deutlich. Technik Nr. 109 S. 275.
Durch Experimente ist neuerdings nachgewiesen, daß manche Muskelfasern von verschiedenen Segmenten des Rückenmarkes aus mit Nerven versorgt werden (plurisegmentelle Innervation).
Die bis dahin noch markhaltige Nervenfaser spitzt sich nun zu, ihre Hülle wird marklos und verschmilzt mit dem Sarkolemm der Muskelfaser. Durch die Auffaserung des Achsenzylinders an dieser Stelle sowie Ansammlung von Zellkernen (die den gliösen Schwannschen Kernen entsprechen) wird die sogenannte motorische Endplatte gebildet. Der Achsenzylinder verschmilzt mit dem Sarkoplasma, wobei seine Aufzweigungen Fibrillennetze bilden, die entweder in sich geschlossen oder offen sind (Fig. 179). Die Nervenendigung liegt also hypolemmal, nicht epilemmal, wie das bei den sensiblen Nervenendigungen an den Muskelfasern (Muskelspindel) der Fall ist.
Nach neueren Untersuchungen (Boeke) soll jede quergestreifte Muskelfaser doppelt innerviert sein; einmal, wie oben beschrieben, durch zerebrospinale, motorische Nerven; außerdem soll an jede Muskelfaser eine sympathische Nervenfaser herantreten, die für den „Tonus“ der Muskulatur verantwortlich gemacht wird. Die letztere verhält sich ähnlich wie die die glatten Muskelzellen versorgenden Nervenfasern.
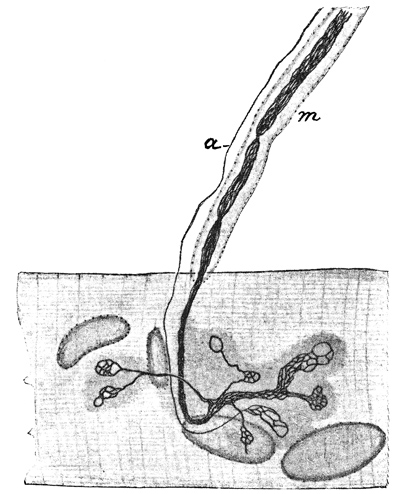
Fig. 179.
Nervenendigungen in einer Muskelfaser der Eidechse (Lazerta). m = Markscheide; a = akzessorische (sympathische?) Nervenfaser (nach Boeke, Anat. Anz. Bd. 35). 2100mal vergrößert. Technik Nr. 11. S. 39.
Technik.
Die Fixation der nervösen Zentralorgane richtet sich danach, welche Elemente in den Präparaten besonders hervorgehoben werden sollen. Unter Hinweis auf die Darstellungen der speziellen Technik des Nervensystems (siehe besonders Spielmeyer, Technik der Untersuchung des zentralen Nervensystems, Berlin, Springer) kommen hier nur die häufigsten wichtigsten Methoden zur Besprechung. Man färbt entweder im Schnitte die Markmäntel der Nervenfasern, sämtliche Zellen oder zum Studium der Zellenform einzelne Zellen mit ihren Fortsätzen. Je nach dem beabsichtigten Färbeverfahren fixiert man in Formalin, Müllerscher Flüssigkeit, Alkohol 96% oder in der Golgi-Mischung. Es empfiehlt, sich von demselben zur Untersuchung gelangenden Gehirn benachbarte Teile in den verschiedenen Mitteln zu fixieren. Will man größere Stücke eines ganzen menschlichen Gehirns konservieren, so muß man genügend große Einschnitte machen, damit die Konservierungsflüssigkeiten genügend in die Tiefe wirken.
Nr. 97. Darstellung der Markscheiden. a) Methode nach Weigert. Etwa 2 cm lange Stücke des frischen Zentralnervensystems aus: 1. der unteren Halsgegend, 2. der mittleren Brustgegend, 3. der Lendengegend, 4. des Hirnstamms, 5. des Kleinhirns, 6. der Großhirnrinde lege man in 200-500 ccm Müllerscher Flüssigkeit ein (auf Watte). Nach 4-6 Wochen, während welcher Zeit die Flüssigkeit mehrmals gewechselt werden muß, kommen die Stücke direkt, ohne vorher ausgewässert zu werden, in ca. 150 ccm 70%igen und am nächsten Tage in ebensoviel 90%igen Alkohol. Das Glas ist im Dunkeln zu halten (S. 15), der Alkohol während der ersten 8 Tage mehrmals zu wechseln. Dann können die Stücke in Zelloidin (S. 23) eingebettet und geschnitten werden. Die (20-50 µ dicken) Schnitte kommen in eine Schale mit ca. 20 ccm 70%igen Alkohol, aus diesem möglichst bald in 20 ccm filtrierte Kupferlösung (S. 8) + 20 ccm destilliertes Wasser und nach ca. 8-12 Stunden direkt in ca. 30 ccm Weigertsches Hämatoxylin. Zu besserer Färbung setze man zu 150 ccm dieses Hämatoxylins 51 ccm gesättigte, wäßrige Lösung von Lithium carbonicum. Nach 12 bis 40 Stunden wird die (unbrauchbar gewordene) Farbe abgegossen und durch zur Hälfte mit destilliertem Wasser verdünnte Blutlaugensalz-Boraxlösung (S. 8) ersetzt, die so oft gewechselt werden muß, als sie Farbe annimmt. Nach 20 bis 60 Minuten (je nach Intensität der Färbung und Dicke des Schnittes) ist die Differenzierung vollendet (graue Substanz gelbbraun, weiße tiefblau; oft sind auch die farbigen Blutzellen dunkel gefärbt), die Schnitte kommen auf 12 bis 24 Stunden in mehrfach zu wechselndes Brunnenwasser und werden dann in Xylolbalsam nach § 10,3 (S. 45) konserviert. Gelingt die Färbung nicht, so hilft oft Einlegen der ungefärbten Schnitte in Müllersche Flüssigkeit (24-40 Stunden), dann 1/2 Minute in Aq. dest. abspülen, dann kupfern usw.
b) Schneller führt die Methode von Spielmeyer zum Ziel. Fixation mindestens 3 Tage in Formalin (S. 14), eine Stunde wässern, 25-35 µ dicke Gefrierschnitte (S. 21); diese kommen für 6 Stunden in eine 2,5%ige Lösung von Eisenalaun (Nr. 18, S. 6). Nach kurzem Abspülen in Wasser kommen die Schnitte für 10 Minuten in 70%igen Alkohol, dann 12 Stunden lang in eine alte Hämatoxylinlösung (man nimmt von einer 10%igen alkoholischen Hämatoxylinlösung 5 Teile auf 100 Teile Aq. dest. und läßt diese Lösung mehrere Wochen stehen; je öfter die Lösung benutzt wird, um so besser färbt sie, weshalb sie nach dem Färben jedesmal in die Flasche zurückfiltriert wird). Nach Abspülen in Wasser werden die schwarzen Schnitte in der Eisenalaunlösung differenziert, bis nur noch die Markscheiden schwarz sind. Nun gründlich wässern, hochführen durch Alkohol in Xylol und Xylolbalsam (§ 10,3 S. 45).
Nr. 98. Zur Darstellung sämtlicher Zellen fixiert und färbt man a) nach Nißl (siehe Nr. 52, S. 148). Man kann auch die nach Nr. 97a in Müllerscher Flüssigkeit fixierten Stücke verwenden und verfährt dann b) folgendermaßen: Nach 4 Wochen werden die Stücke direkt aus der Müllerschen Flüssigkeit in etwa 50 ccm karminsaures Natron (1%ige wässerige Lösung) auf 3 Tage übertragen. Während dieser Zeit muß das Glas mit den Stücken öfter geschüttelt werden. Die so gefärbten Stücke kommen in (womöglich fließendes) Wasser 24 Stunden, dann in ca. 150 ccm 70%igen Alkohol 5 Stunden, dann in ebensoviel 96%igen Alkohol, dann Zelloidineinbettung (siehe S. 23).
Die Schnitte werden in Xylolbalsam (S. 45) konserviert (Fig. 148). Bei dieser Methode werden auch Achsenzylinder und gliöse Bestandteile neben Nervenzellen gefärbt.
Nr. 99. Darstellung einzelner Zellen nach Golgi. a) Man präpariere bei neugeborenen Ratten oder Mäusen das Rückenmark mitsamt der noch knorpligen Wirbelsäule heraus und behandle sie nach der S. 36 angegebenen Methode. Der Aufenthalt der Stückchen in der Golgischen Mischung (beziehungsweise Kalibichromat-Formol) beträgt
2-3 Tage, wenn man Neurogliazellen,
3-5 Tage, wenn man Nervenzellen,
5-7 Tage, wenn man Nervenfasern (Kollateralen)
erhalten will. Läßt man die Mischung zu kurz einwirken, so erscheinen die Schnitte in ihren zentralen Teilen undurchsichtig und durchsetzt mit zahlreichen Niederschlägen; läßt man die Mischung zu lang wirken, so erfolgt keine genügende Schwärzung der Elemente. Da die Stückchen nach dem Herausnehmen aus der Silberlösung sofort weiter verarbeitet werden müssen, bringe man immer nur je ein Stückchen in den absoluten Alkohol. Die Zelloidinschnitte (s. S. 23) werden durch Rückenmark und Wirbelsäule geführt.
Noch bessere Resultate liefert das Rückenmark von 3-7 Tage alten Hühnerembryonen, Einbetten in Zelloidin (s. S. 23). Auch das Rückenmark junger Katzen sowie dasjenige menschlicher Feten von 20-40 cm Länge gibt sehr brauchbare Bilder.
b) Für Großhirnrinde sind am besten geeignet 8-30 Tage alte Mäuse (Einwirkungsdauer der Golgimischung 2-3 Tage) oder 1-15 Tage alte Kaninchen und junge, bis zu 6 Wochen alte Katzen (Einwirkungsdauer der Golgimischung 5 Tage). Gehirnstückchen Erwachsener müssen 8-15 Tage in der Golgimischung verweilen.
c) Kleinhirnrinde. Man nimmt am besten das aus dem Schädel genommene Kleinhirn neugeborener Meerschweinchen und junger bis 6 Wochen alter Katzen. Die Färbung der Kleinhirnelemente erfolgt schwieriger als diejenige des Großhirns und des Rückenmarks. Mißerfolge sind hier häufiger. Die Schnitte sind hauptsächlich senkrecht zur Längsrichtung der Windungen zu führen.
Nr. 100. „Eosinkörper“. a) Kleine Stücke der Kleinhirnrinde (Fixation Müllersche Flüssigkeit s. Nr. 97a) werden in Paraffin oder Zelloidin eingebettet (S. 23) in 7,5 µ dicke Schnitte zerlegt und mit Hansens Hämatoxylin (S. 32) und Eosin (S. 41) gefärbt.
b) Klarer ist die Färbung dieser Gebilde bei der Behandlung nach Techn. Nr. 3, S. 72.
Nr. 101. Corpuscula amylacea. Gehirn älterer Personen. Man streiche mit einem Skalpell über die mediale, dem 3. Ventrikel zugekehrte Fläche des Sehhügels und zerteile den so gewonnenen Brei mit der Nadel in einigen Tropfen Kochsalzlösung. Deckglas! Die Corpuscula sind, wenn vorhanden, leicht zu finden und durch ihre bläulich grüne Farbe und die Schichtung erkennbar (Fig. 180a). Man verwechsle sie nicht mit Tropfen ausgetretenen Nervenmarkes (b), die stets hell und nur doppelt konturiert sind. Außerdem finden sich in solchen Präparaten zahlreiche rote Blutzellen, Ependymzellen (d), markhaltige Nervenfasern von verschiedener Dicke (e) und Ganglienzellen; letztere sind oft sehr blaß und nur durch ihre Pigmentierung aufzufinden (f). Selbst nicht mehr ganz frische menschliche Gehirne sind noch tauglich.
Nr. 102. a) Ein ca. 1 cm langes Stück des Plexus chorioideus wird in einem Tropfen Kochsalzlösung ausgebreitet, mit einem Deckglase bedeckt. Man sieht, die gewundenen roten Blutgefäße und das Epithel des Plexus. Der Anfänger verwechsle nicht die dunklen Haufen von Fett- oder Pigmentkörnchen mit den hellen Kernen der Epithelzellen.
b) Sehr hübsche Dauerpräparate erhält man folgendermaßen: Man breite ein Stückchen Plexus sorgfältig in Kochsalzlösung aus; sind gute Stellen bei schwacher Vergrößerung sichtbar, dann lasse man die Kochsalzlösung abfließen und bringe ein paar Tropfen Zenkersche Flüssigkeit (S. 16) darauf; dann wird ein Deckglas aufgelegt, an dessen Rand man noch etwas Zenker Fl. zusetzt. Nach 30 Minuten verdränge man diese Flüssigkeit durch destill. Wasser (S. 47), nach weiteren 30 Minuten das Wasser durch 50%igen Alkohol, dem man ein paar Tropfen Jodtinktur zugesetzt hat. Nach 15 Minuten nehme man das Deckglas ab und übertrage das nunmehr fixierte Präparat in eine Uhrschale mit neuem 50%igem, weingelben Jodalkohol, dem Jodtinktur zugesetzt wird, falls der Alkohol rasch abblaßt. Nach 15-30 Minuten wird das Objekt in reinen 70%igen Alkohol übertragen und nach ca. 12 Stunden mit Hämatoxylin und Eosin (S. 41) gefärbt und in Xylolbalsam (S. 45) eingeschlossen.
c) Schnittpräparate fertige man aus mit Formolalkohol (S. 15) fixierten, in Zelloidin (S. 23) oder Paraffin (S. 22) eingebetteten Stücken des Plexus eines menschlichen Gehirnes an. Färbung mit Hansens Hämatoxylin (S. 32) und Eosin (S. 41).
Nr. 103. Querschnitte der Nervenfaserbündel. Ein Stück eines Nerven, z. B. des N. ischiadicus, womöglich vom Menschen, der ein gut entwickeltes Endoneurium besitzt, wird nach der Nr. 60 (S. 150) angegebenen Methode aufgebunden und in Müllerscher Flüssigkeit 4 Wochen fixiert (siehe weiter 6, S. 15). Ist die Härtung vollendet, so bette man in Zelloidin ein. Der Schnitt wird nach van Gieson gefärbt (18, S. 42) und nach § 10,3, S. 45 in Xylolbalsam eingeschlossen.
Ist der Schnitt gelungen, so sieht man den meist etwas zackig geschrumpften Achsenzylinder, ähnlich einem gelb-roten Kern, umgeben von dem gelblichen Marke, das seinerseits wieder von einer dunkelroten Hülle (Neurilemm und Fibrillenscheide) umfaßt wird. Die Querschnitte der Nervenfasern hat man „Sonnenbildchenfigur“ genannt (Fig. 163).
Nr. 104. Spinalganglien sind schwer erreichbar; man schneide deshalb das lateral von der Spitze der Felsenbeinpyramide gelegene Ganglion Gasseri aus und fixiere es 24 Stunden in ca. 100 ccm Zenkerscher Flüssigkeit (Weiterbehandlung S. 16). Möglichst feine Quer- und Längsschnitte (Paraffin S. 22) färbe man in Hämatoxylin und in Eosin (S. 41) und konserviere sie in Xyolbalsam. Zuweilen kontrahiert sich das Zytoplasma der Ganglienzellen und erhält dadurch eine sternförmige Gestalt, die den Ungeübten leicht zu einer Verwechslung mit einer multipolaren Ganglienzelle veranlassen könnte.
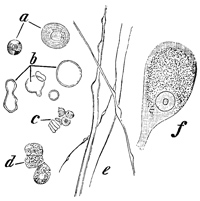
Fig. 180.
Aus einem Zupfpräparate der grauen Höhlenschicht des Menschen. 240mal vergrößert. a Corpuscula amylacea, b Myelintropfen, c rote Blutzellen, d Ependymzellen, e markhaltige Nervenfaser, f Ganglienzelle. Technik Nr. 101, S. 272.
Die T-förmige Teilung sieht man an Rückenmarkspräparaten, die nach Nr. 99 behandelt sind. Bei den jungen Embryonen sind die Spinalganglienzellen noch bipolar; unipolare Zellen findet man am besten bei ca. 17 Tage alten Hühnerembryonen. Übergänge bei 9-14 Tage alten Hühnerembryonen und bei Kaninchenembryonen von 5-12 cm Länge. Besonders zu empfehlen ist die Färbung mit Methylenblau (S. 36).
Nr. 105. Sympathische Ganglien. Das große Gangl. cervicale supremum n. sympath. wird fixiert und gehärtet wie Nr. 104. Schon bei schwacher Vergrößerung erkennt man als Charakteristikum die vielen Schräg- und Querschnitte markloser Nervenfaserbündel; die Ganglienzellen sind zwar deutlich zu sehen, ihre Fortsätze treten aber nur sehr ungenügend zutage: an vielen Ganglienzellen sucht man in den Schnitten vergeblich nach den Fortsätzen. Letztere werden besser nach Methode Nr. 99 dargestellt, man wähle als Objekt den Halsteil 10-15tägiger Hühnerembryonen; noch bessere Resultate gibt die Färbung mit Methylenblau (S. 36); auch Darmstücke neugeborener Kinder (Ganglien des Plexus myentericus) sind noch zu gebrauchen.
Nr. 106. Einfache Tastzellen, intraepitheliale Nervenfasern, Langerhanssche Zellen, Tastkörperchen. Man schneide von der Volarseite eines frisch amputierten Fingers (einer Zehe) mit scharfem Rasiermesser mehrere kleine ca. 5 mm lange und breite, höchstens 1 mm dicke Stückchen der Epidermis und der obersten Schichten des Korium ab (etwa anhaftendes Fett der unteren Koriumschichten muß sorgfältig entfernt werden) und lege sie in die vorher zubereitete Goldameisensäure (s. weiter Nr. 10, S. 38). Die gehärteten Stückchen werden in Leber eingeklemmt und geschnitten (oder nach Zelloidineinbettung S. 23). Konservieren in Xylolbalsam (S. 45). Die Epidermis ist rotviolett in verschiedenen Nuancen, die Kerne sind nur stellenweise deutlich, oft gar nicht wahrzunehmen; das Korium ist weiß, die Kapillaren, die Ausführungsgänge der Knäueldrüsen und die Nerven sind dunkelviolett bis schwarz. Für die einfachen Tastzellen sind möglichst feine Schnitte anzufertigen. Man findet sie oft in der Nähe der Knäueldrüsenausführungsgänge (Fig. 171). Man hüte sich vor Verwechslungen mit geschrumpften Epithelzellenkernen.
Die intraepithelialen Nervenfasern erscheinen als feine Fäden; ihr Zusammenhang mit den im Korium verlaufenden Nervenfasern ist nur schwer zu finden. Ausläufer von Langerhansschen Zellen können an feinen Schnitten zur Verwechslung mit intraepithelialen Nervenfasern führen (Fig. 171).
Langerhanssche Zellen und Tastkörperchen sind leicht zu sehen; an dicken Schnitten sind die Tastkörperchen tief schwarz, an dünnen Schnitten rotviolett.
Für die feineren Verhältnisse seien die Methoden der Methylenblaufärbung (S. 36) und der Nervenfibrillenfärbung (S. 39) empfohlen.
Für Sehnenspindeln sind die vorderen Hälften der geraden Augenmuskeln des Rindes sehr geeignet, die mit Methylenblau (S. 36) gefärbt und nach § 10,3 (S. 45) in Xylolbalsam konserviert werden.
Nr. 107. Die Lamellenkörperchen entnimmt man am besten dem Mesenterium einer frisch getöteten Katze. Sie sind dort mit unbewaffnetem Auge meist leicht als milchglasartig durchscheinende, ovale Flecke zu erkennen, die zwischen den Fettsträngen des Mesenterium liegen. Ihre Anzahl wechselt sehr, zuweilen sind sie nur spärlich vorhanden und von so geringer Größe, daß ihr Auffinden schon genaues Zusehen erfordert. Dieser Fall lag bei der Anfertigung des Fig. 173 abgebildeten Präparats vor; das Körperchen ist sehr klein. Man schneide mit der Schere das das Körperchen enthaltende Stückchen Mesenterium heraus, breite es in einem Tropfen Kochsalzlösung auf dem Objektträger (schwarze Unterlage!) aus und suche es mit Nadeln von den anhaftenden Fetträubchen zu befreien. Man hüte sich, dabei das Körperchen selbst anzustechen. Bei schwacher Vergrößerung (ohne Deckglas) überzeuge man sich, ob das Körperchen hinreichend isoliert ist und bedecke es dann nochmals mit einem Tropfen Kochsalzlösung und einem Deckglase. Druck muß sorgfältig vermieden werden (Fig. 173).
Bei starken Vergrößerungen sieht man deutlich die Kerne der zwischen den Kapseln gelegenen Zellen. Will man konservieren, so lasse man 1-2 Tropfen der 1%igen Osmiumsäure unter dem Deckglase zufließen (S. 47) und ersetze die Säure, nachdem das Nervenmark schwarz, der Innenkolben braun geworden ist, durch sehr verdünntes Glyzerin. Auch die S. 36 angegebene Methylenblaufärbung ist (nur Geübten) zu empfehlen.
Nr. 108. Motorische Nervenendigungen, Endverästelungen. Man schneide 3-4 cm lange, 2-3 Interkostalräume umfassende Stücke der Thoraxwand eines Kaninchens aus und vergolde sie nach der Nr. 10 (S. 38) angegebenen Weise. Nachdem die dunkelvioletten Stückchen 3-6 Tage in 70%igem Alkohol gelegen haben, breite man ca. 5 mm breite Bündel der Muskelfasern in einem Tropfen verdünnten Glyzerins aus, dem man einen ganz kleinen Tropfen Ameisensäure zugesetzt hat. Ein auf das Deckglas ausgeübter, leichter Druck ist oft von Vorteil. Zum Aufsuchen der Endverästlungen verfolge man die schon bei schwacher Vergrößerung kenntlichen, tiefschwarzen Nervenfasern (Fig. 177). Zusatz eines weiteren Tropfens Ameisen- oder Essigsäure macht das Bild oft deutlicher.
Auch die Methode Nr. 11, S. 39 gibt, richtig angewandt, ausgezeichnete Bilder (Fig. 179).
Nr. 109. Kerne der motorischen Platte. Man lege die vorderen Hälften der Augenmuskeln eines frisch getöteten Kaninchens in 97 ccm destill. Wasser + 3 ccm Essigsäure. Nach 6 Stunden übertrage man die Muskeln in destill. Wasser, schneide ein flaches Stückchen mit der Schere ab und breite es auf dem Objektträger aus. Schon mit unbewaffnetem Auge sieht man die Verästlungen der weiß aussehenden Nerven deutlich; bei schwachen Vergrößerungen (50mal) erblickt man die Anastomosen der Nervenbündel, sowie die durch ihre quergestellten Kerne (der glatten Muskelfasern) leicht kenntlichen Blutgefäße. Das Auffinden der Endplatten ist wegen der großen Anzahl der scharf konturierten Kerne, welche dem intermuskulären Bindegewebe usw. angehören, nicht leicht. Verfolgt man eine Nervenfaser, so sieht man bald, daß deren doppelt konturierte Markscheide plötzlich aufhört und sich in eine Gruppe von Kernen verliert. Das sind die Kerne der motorischen Platte, deren übrige Details nicht deutlich sichtbar sind. Die Querstreifung der Muskelfasern, die sehr blaß sind, ist oft sehr wenig deutlich (Fig. 178).
IV. Innersekretorische Organe.
Gemäß den obigen (S. 83) Ausführungen beschränken wir den Begriff der Sekretion auf Vorgänge, die unter Anteilnahme aktiver Arbeitsprozesse von seiten der Zellen zur Entstehung von Substanzen führen, die für den Körper noch nutzbar gemacht werden, dabei aber die Zellen verlassen.
Die Lehre von der inneren Sekretion faßt aber für gewöhnlich den Begriff weiter und dehnt ihn auf alle Vorgänge aus, die eine chemische oder physiko-chemische Korrelation unter verschiedenen Systemen des Körpers herbeiführen, wobei es oft noch nicht klargestellt ist, ob dabei das betreffende innersekretorische Organ oder Gewebe eine Substanz (Sekret) produziert, die auf dem Blut- oder Lymphwege andere Systeme beeinflußt, oder ob die Wirkung des betreffenden Organs vielmehr darin zu suchen ist, daß es bestimme Stoffe an sich reißt und zerstört. Dieser letztere Vorgang wäre aber nicht als Sekretion in unserem Sinne aufzufassen.
Angesichts der Tatsache, daß über die allgemeine Bedeutung solcher Vorgänge noch keine feststehende Meinung vorhanden ist, beschränken wir uns an dieser Stelle auf die Darstellung derjenigen Gebilde, deren Hauptfunktion in einer durch den Begriff „innere Sekretion“ umschriebenen Beeinflussung des Organismus zu suchen ist. Wir geben dabei zu, daß außer den hier besprochenen Gebilden noch andere Organe zum Teil erwiesene endokrine Funktionen besitzen (Keimdrüsen, Teile des Pankreas, vielleicht auch Milz), die aber in diesen Fällen zu einer, von uns als Hauptfunktion betrachteten, anderen Aufgabe hinzutreten.
Bei dem heutigen Stand unserer Kenntnisse ist es noch nicht möglich, die hier zu besprechenden Gebilde nach ihrer Bedeutung zu gruppieren, weshalb wir es vorziehen, diese Organe nach ihrem entwicklungsgeschichtlichen Zusammenhange geordnet zu besprechen.
Auffallend ist dabei die Produktivität des embryonalen Kopfdarmes, dessen ventrale und lateralen Bildungsprodukte (Gl. thyreoidea, Gl. parathyreoideae, Gl. thymus) wir auch hinsichtlich ihrer späteren Lage zu einer Gruppe zusammenfassen, wenngleich sie im Bau und in ihrer Funktion tiefgreifende Unterschiede aufweisen.
Eine zweite Gruppe (Gl. hypophysis und Gl. epiphysis) haben die Anteilnahme zerebraler Elemente an ihrem Aufbau gemeinsam; die bedeutendste sekretorische Funktion entfaltet allerdings der Rachenteil der Hypophyse, der sich frühzeitig vom Kopfdarmdache abschnürt.
Die dritte Hauptgruppe endlich (die chromaffinen Organe), deren Ausbreitung in der Tierreihe große Differenzen aufweist, ist beim Menschen in Verbindung mit dem Interrenalorgan (der Nebennierenrinde) als Gl. suprarenalis ein äußerst wichtiges Organ; das chromaffine Gewebe (am reichlichsten im Nebennierenmarke ausgebildet) leitet sich embryonal vom sympathischen Nervensystem ab.
I. a) Gl. Thyreoidea.
Die Schilddrüse entsteht im wesentlichen aus einer medianen Wucherung der ventralen Schlundwand und bietet anfangs das Bild einer tubulösen zusammengesetzten, netzförmigen Drüse; ihr am Foramen coecum der Zunge mündender Ausführungsgang (Ductus thyreoglossus) obliteriert jedoch schon frühzeitig in embryonaler Zeit und bildet sich bis auf einzelne Reste zurück; auch das Netz der Drüsenröhrchen, die anfangs nicht hohl sind, zerschnürt sich in kurze Stücke. (Siehe auch S. 87).
Beim erwachsenen Menschen besteht die Schilddrüse aus länglichrunden, beiderseits blind endenden „Follikeln“, das sind Schläuche von sehr verschiedenem (40-120 µ) Durchmesser, welche durch lockeres, mit elastischen Fasern durchsetztes Bindegewebe zu Läppchen miteinander verbunden werden. Eine Membrana propria fehlt. Die Follikel sind mit einer einfachen Lage bald zylindrischer, bald kubischer, bald platter Epithelzellen ausgekleidet, die beim Menschen Körnchen von Fett und azidophiler Substanz enthalten; diese Körnchen faßt man als Vorstufen des Sekretes auf. Das Lumen der Follikel ist mit einer homogenen, zähen Masse, der kolloiden Substanz, die jene Körnchen und Vakuolen enthält, gefüllt. Die Vakuolen sind teils Kunstprodukte, teils enthalten sie Fett oder Muzin.
Früher galt die kolloide Substanz für ein Charakteristikum der Schilddrüse; seitdem aber dem Kolloid ähnliche Massen auch in der Hypophyse (S. 282) gefunden worden sind, und da auch in den Blut- und Lymphgefäßen des Halses das geronnene Blutplasma dem Kolloid sehr ähnlich sehen kann, verliert dieses Merkmal seinen diagnostischen Wert. Auch ist es noch nicht sicher, daß das „Kolloid“ als das spezifische Sekret aufzufassen ist. Auf welchen Wegen das von der Schilddrüse gelieferte Sekret abfließt, ist noch dunkel. Es ist beobachtet worden, daß an den Knotenpunkten des Schlußleistennetzes die Kittsubstanz überall fehlt; vielleicht handelt es sich hier um ein Auseinanderweichen der Epithelzellen zum Zwecke des Sekretabflusses zu den Lymphwegen. Möglicherweise wird das Sekret auch von den Blutgefäßen aufgenommen.
Die sehr zahlreichen Blutgefäße lösen sich in ein die Schläuche umspinnendes Netz von Kapillaren auf, welche dicht unter dem Epithel liegen. Die kleinen Schilddrüsenarterien besitzen normalerweise vorkommende Verdickungen der Intima und der Media, sogenannte „Knospen“. Die ebenfalls zahlreichen Lymphgefäße bilden ein zwischen den Schläuchen gelegenes Netzwerk. Die Nerven verlaufen mit den Blutgefäßverzweigungen und bilden vorzugsweise diese, zum Teil auch die Drüsenschläuche umspinnende Geflechte. Ein Eindringen von Endzweigen in das Epithel ist nicht beobachtet.
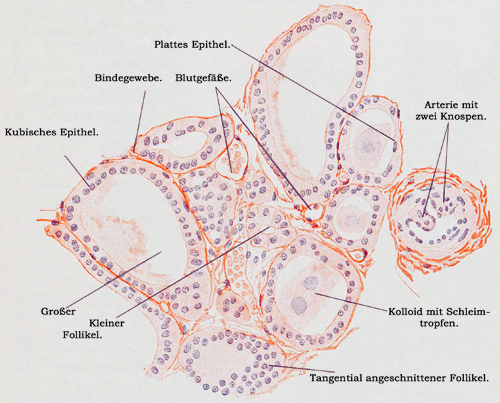
Fig. 181.
Ein Läppchen aus einem feinen Durchschnitte der Schilddrüse eines erwachsenen Menschen. 220mal vergrößert. Man beachte den verschiedenen Durchmesser der Schläuche. Technik Nr. 111, S. 290.
Der Mechanismus der Schilddrüsenwirkung ist noch nicht aufgeklärt, wenngleich wir heute wissen, daß die Schilddrüse zu den lebensnotwendigen Organen gehört. Umfangreiche Erkrankungen dieses Organes rufen schwere Stoffwechselstörungen hervor, die den ganzen Körper beeinflussen. Bei wachsenden Organismen äußert sich der Mangel der Schilddrüsenfunktion z. B. in einem mangelhaften Wachstum besonders der Röhrenknochen, mangelhafter Ausbildung der Intelligenz usw. (Kretinismus). Zu lebhafte Schilddrüsenfunktion macht sich in mannigfachen, schweren Störungen des vegetativen Nervensystems geltend, die, mit anderen Erscheinungen verknüpft, das Bild der Basedowschen Krankheit hervorrufen. Alle diese und viele experimentelle Erfahrungen sprechen dafür, daß normalerweise von der Schilddrüse eine Substanz produziert wird, die im Haushalt des Körpers eine wichtige, regulierende Funktion ausübt.
b) Glandulae parathyreoideae.
Die an der Rückfläche der seitlichen Schilddrüsenlappen gelegenen, gewöhnlich in der Vierzahl vorhandenen „Epithelkörperchen“ stammen in ihren epithelialen Anteilen vom Epithel der dritten und vierten Schlundtasche ab; sie besitzen im allgemeinen keine Drüsenähnlichkeit mehr und sind im Bau wie in der Funktion als von der Schilddrüse völlig verschiedene Organe zu betrachten, wenngleich sie beim Menschen in innigster Lagebeziehung mit jener stehen.
Die Epithelkörperchen bestehen aus Nestern und Strängen von Epithelzellen (Fig. 182), die von spärlichem, Blutgefäße führendem Bindegewebe umgeben werden; dieses Bindegewebe bildet an der Oberfläche des Organes eine dünne Kapsel.
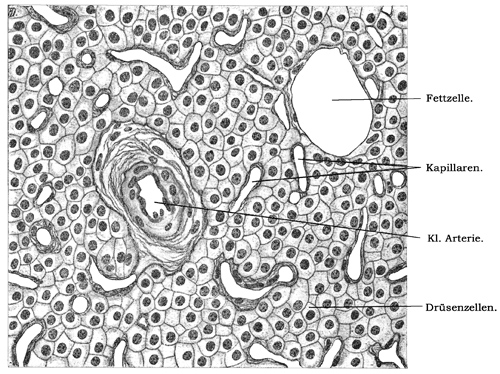
Fig. 182.
Aus einem Schnitt durch eine Gl. parathyreoïdea des Menschen. 520mal vergrößert. Technik Nr. 112, S. 290.
Unter den Epithelzellen finden sich vereinzelt oder gruppenweise sogenannte oxyphile (d. h. eosinfärbbare) Zellen, wahrscheinlich bestimmte Funktions- oder Degenerationsphasen der „Hauptzellen“, die selbst durch ein sehr substanzarmes Zytoplasma ausgezeichnet sind.
Gelegentlich umschließen auch die Epithelzellen der Parathyreoideae kleine, mit einer kolloidähnlichen Masse erfüllte, Hohlräume; dies Verhalten hat, neben anderen Befunden die heute nur mehr wenig vertretene Ansicht entstehen lassen, daß die Epithelkörperchen nur andere Funktionsstadien des Schilddrüsengewebes seien. Gegen diese Ansicht spricht einmal die andersartige Entstehung, dann das histologische Verhalten, vor allem aber die Funktion.
Die Entfernung der Epithelkörperchen, die heute bei allen umfänglicheren Schilddrüsenoperationen vermieden wird, verursacht schwere Krämpfe (Tetanie).
c) Thymus.
Der Thymus entsteht paarig aus dem Epithel der 3. Viszeralspalte als eine anfänglich hohle, später solide Ausstülpung, die, von ihrem Mutterboden sich abschnürend, verästelte Sprossen, Läppchen treibt. Schon im 4. Fetalmonat ist der Thymus ein gelappter Körper, der von lockerem, fibrillärem Bindegewebe, dem Träger der größeren Blut- und Lymphgefäße, umgeben wird. Durchschnitte von Thymusläppchen zeigen eine dunklere Rindensubstanz (Fig. 183), welche aus einem durch sternförmige Epithelzellen gebildeten Netz besteht, in dessen Maschen viele, sehr zytoplasmaarme Lymphozyten liegen.
Die Lymphozyten werden von manchen Autoren für umgewandelte Epithelzellen gehalten; doch sprechen alle neueren Forschungsergebnisse für die oben dargestellte, von den meisten Autoren heute geteilte Ansicht. Trotzdem ist der Thymus nicht zu den echten lymphatischen Organen zu zählen, da ihm ein wichtiges Merkmal derselben, die Keimzentren, fehlt; auch ist das den Lymphozyten als Aufenthalt dienende Retikulum nicht ein dem retikulären Gewebe der Lymphknoten entsprechendes Gewebe, sondern epithelialer Herkunft.
Die zentrale Partie des Thymus, die Marksubstanz, ist heller, nicht immer scharf von der Rinde getrennt und besteht zum Teil aus ähnlichen Zellen wie die Rinde, zum Teil aus größeren, entweder einzelnen sternförmigen, oder in Gruppen beisammenliegenden, typischen Epithelzellen. Beide Substanzen werden frühzeitig von Blutgefäßen durchwachsen, in deren Begleitung zarte Züge von Bindegewebe und Leukozyten — auch eosinophile Zellen (S. 95) befinden sich unter diesen — eindringen. Etwa im 5. Fetalmonat entstehen in der Marksubstanz die „Hassalschen Körperchen“, Gruppen konzentrisch zusammengeballter Epithelzellen, von denen die zentralsten chromatinarme Kerne (Zeichen baldigen Absterbens) enthalten. Die Körperchen sind anfangs klein (10-12 µ) und nur in geringer Anzahl vorhanden, nehmen aber rasch an Größe zu (- 180 µ), während immerzu neue entstehen, so daß das Thymusmark des Neugeborenen sehr viele Hassalsche Körperchen verschiedenster Größe enthält (Fig. 185).
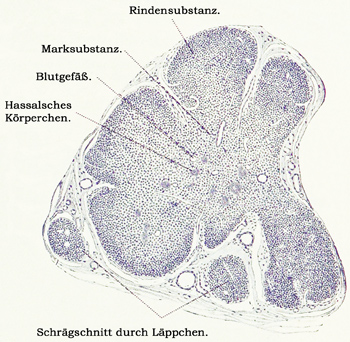
Fig. 183.
Stück eines Schnittes durch den Thymus eines 5monatigen menschl. Fetus. 50mal vergrößert. Technik Nr. 113, S. 290.
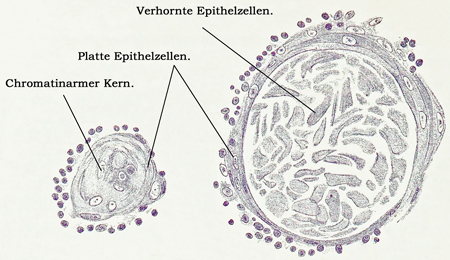
Fig. 184.
Hassalsche Körperchen aus einem Thymusschnitt von einem 23jährigen Hingerichteten. 360mal vergrößert. Technik Nr. 113, S. 290.
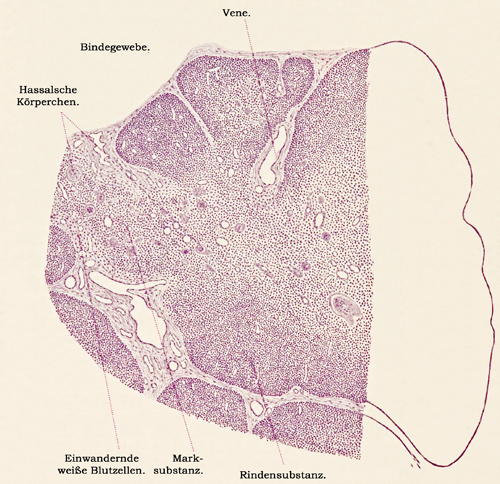
Fig. 185.
Stück eines Schnittes durch den Thymus eines neugeborenen Menschen. 50mal vergrößert. Technik Nr. 113, S. 290.
Um diese Zeit ist der Thymus zu einem stattlichen Körper herangewachsen, der durch stärkere Züge mit elastischen Fasern untermengten Bindegewebes in 4-11 mm große Läppchen geteilt wird, die wieder durch feinere Bindegewebszüge in kleinere, 1 qmm große Läppchen getrennt werden und durch die Marksubstanz, die sich streckenweise später zu einem immer dünner werdenden Strang, dem „Markstrang“ auszieht, miteinander in Verbindung stehen (Fig. 186). Der feinere Bau des Thymus des Neugeborenen zeigt in der Rindensubstanz das gleiche Bild wie früher; die epithelialen Teile bilden vorwiegend das Retikulum; sie werden an der Grenze der Marksubstanz zu größeren Elementen, die das Material zu den Hassalschen Körperchen liefern, die auch nach der Geburt noch an Zahl und Größe (- 0,3 mm) zunehmen und nun deutliche Spuren inneren Zerfalles (zugrunde gehende Kerne, kernlose Schüppchen, eindringende Lymphozyten) zeigen. Als zweiter Hauptbestandteil kommen, in der Rinde zahlreicher als im Mark, die eingewanderten Lymphozyten hinzu, die sich besonders in der Rinde lebhaft vermehren. Teilweise bilden sie sich auch zu Plasmazellen (s. S. 95) um. Da das Mark viel weniger Mitosen enthält — sie fehlen völlig in den Hassalschen Körperchen — als die Rinde, so darf man annehmen, daß die Rinde des Thymus die Produktions-, das Mark die Wachstums- und Degenerationszone der Thymussubstanz darstellt.
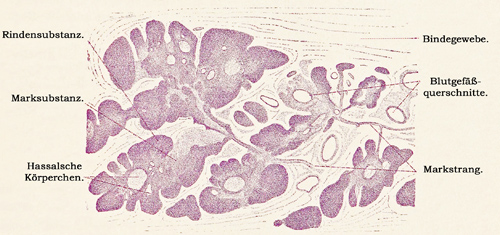
Fig. 186.
Querschnitt durch ein Thymusstück eines 13/4jährigen Kindes. 21mal vergrößert. Technik Nr. 113, S. 290.
Die zu sehr wechselnden Zeiten einsetzende „Rückbildung“ des Thymus besteht zum Teil darin, daß in dem interlobulären Bindegewebe sich ansehnliche Mengen von Fettgewebe bilden, wodurch die Läppchen auseinandergesprengt werden. Dadurch geht der Thymus als zusammenhängender Körper verloren; von den isolierten Läppchen verfällt ein Teil der Rückbildung, sie verschwinden schließlich völlig, d. h. sie werden zu größeren, den Markzellen gleichen Elementen, während das Mark selbst weiterem Untergang und der Abfuhr durch weiße Blutzellen entgegen geht. Ein anderer Teil der Läppchen aber erhält sich bis ins hohe Alter; dabei kann sich die peripherste Schicht der Rindensubstanz zu einer einfachen oder mehrfachen Lage typischer Epithelzellen umgestalten.
Die Arterien verlaufen zwischen Rinde und Mark und speisen Kapillaren, die größtenteils in der Rinde, zum kleineren Teile im Marke gelegen sind. Die daraus sich sammelnden Venen verlaufen teils im Mark, teils münden sie in große, zwischen den Läppchen verlaufende Venenstämmchen. Die vielen Lymphgefäße sammeln sich aus weiten, dicht an der Oberfläche der Läppchen gelegenen Lymphräumen zu großen, im interlobulären Bindegewebe gelegenen Stämmchen, die weiterhin als klappenführende Gefäße neben den größeren Blutgefäßen hinziehen. Die Nerven enden im wesentlichen an den Blutgefäßen, nur äußerst spärliche Fäserchen dringen frei endend in das Mark.
Die Aufgabe des Thymus im Organismus ist noch nicht völlig geklärt; jedenfalls ist die Drüse in der Zeit bis zur beginnenden Altersinvolution bei der Regulierung des Knochenwachstums, der Entwicklung der Keimdrüsen und der Regulation der Funktionen des Nervensystems stark beteiligt. In diesen Beziehungen machen sich bei Tieren die schwersten Störungen geltend, wenn der Thymus entfernt wird; doch sind zum Teil bei verschiedenen Tierarten die Ergebnisse solcher Versuche noch nicht eindeutig. Vor allem wissen wir noch nicht, ob die Bedeutung des Thymus in der Produktion eines spezifischen Sekretes besteht oder darin, daß giftige Stoffwechselprodukte im Thymus gebunden und zerstört werden.
II. a) Hypophysis cerebri.
Das histologische Aussehen eines Teiles dieser Drüse würde es gerechtfertigt erscheinen lassen, sie mit der Schilddrüse und den Epithelkörperchen in eine Gruppe zu vereinigen; die topographische Beziehung zum Gehirn, die die Hypophyse mit der Epiphyse gemeinsam hat, veranlaßt uns, sie bei dem gegenwärtigen unsicheren Stand der Gruppierung der innersekretorischen Organe mit der Epiphyse zusammenzustellen.
In sehr früher Embryonalperiode streben zwei sackartige Anlagen aus zwei ganz verschiedenen Mutterböden zueinander, um die Hypophyse zu bilden. 1. Aus dem Dach der primitiven ektodermalen Mundbucht entsteht die anfangs schlauchförmige Hypophysentasche, die in der ausgebildeten Hypophyse zwei Anteilen entspricht: einmal der Pars intermedia (oder infundibularis), die etwa die Mitte des ganzen Organes einnimmt; dann dem Vorderlappen (Fig. 187).
2. Scharf abgesetzt von diesen beiden Teilen ist die mit dem Infundibulum des Zwischenhirnes verbundene Anlage des Hinterlappens, aus der außer dem Hinterlappen auch der Stiel der Hypophyse entsteht (Fig. 187).
Von dem ursprünglichen Zusammenhang der oralen Hypophysenanlage mit dem Munddach erhält sich in der Regel nur eine kleine, wie der Vorderlappen gebaute, „Hypophysis pharyngea“; diese liegt konstant an der Stelle, die der Ausmündung des embryonal vorhandenen, nur selten dauernd erhaltenen, Can. cranio-pharyngeus entsprechen würde.
Der Vorderlappen der Hypophyse ist nach dem Typus des Epithelkörpers gebaut und enthält, eingebettet in lockeres, viele Blutgefäße und Nerven tragendes Bindegewebe, solide, verzweigte Epithelzellenstränge, die von sehr ungleichmäßigem Kaliber sind und vielfach miteinander anastomosieren.
Die einzelnen Zellen bieten ein verschiedenartiges Aussehen dar; die Tatsache, daß in den untersuchten Fällen die Verteilung der Zellformen sehr verschieden war, läßt es denkbar erscheinen, daß die drei gefundenen Zellarten nur verschiedenen Funktionszuständen einer einzigen Zellart entsprechen.
Die häufigste Form, die Hauptzellen, zeichnet sich durch ein substanzarmes, wenig färbbares Zytoplasma aus, der Kern ist groß und locker gebaut. Diese Zellen wandeln sich im Laufe der Schwangerschaft unter lebhafter Vermehrung und Vergrößerung in die sogenannten Schwangerschaftszellen um (Fig. 188).
Unter den anderen Zellen, die sich an einer stärkeren Zytoplasmafärbbarkeit erkennen lassen, unterscheidet man azidophile und basophile Zellen; die ersteren (Fig. 188a), lebhaft eosinfärbbar, sollen sich vorzugsweise in den hinteren Teilen des Vorderlappens finden; ihre Zahl ist bei manchen Hypophysenerkrankungen, die mit einer Steigerung der Hypophysenfunktion verbunden sind, vermehrt (Akromegalie z. B., siehe unten). Die basophilen Zellen sind weniger häufig, ihr Zelleib färbt sich mit basischen Farbstoffen dunkel (Fig. 188b).
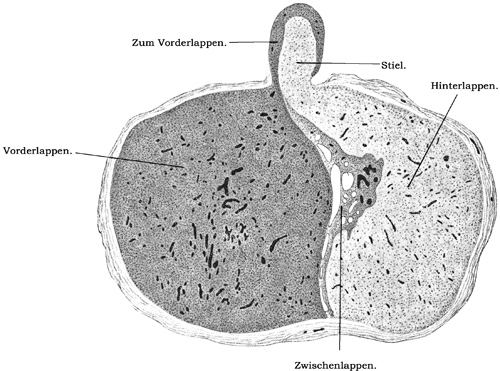
Fig. 187.
Medianschnitt durch die Hypophyse des Menschen. 9mal vergrößert. Technik Nr. 114, S. 290.
Der Pars intermedia (Zwischenlappen) sind verschiedene von Epithel umsäumte Hohlräume eigentümlich, die von dem ursprünglichen Lumen der oralen Hypophysenanlage abstammen. Beim Kind und zeitlebens bei vielen Tieren ein einheitlicher, von flimmerndem Zylinderepithel ausgekleideter Spalt an der Grenze von Vorder- und Hinterlappen, ist dieser Hypophysenabschnitt beim erwachsenen Menschen von größeren und kleineren, zum Teil miteinander anastomosierenden Hohlräumen eingenommen. Diese (Fig. 188b) sind von verschieden hohen Epithelzellen umsäumt und mit einem Sekret erfüllt, das nur teilweise dem Kolloid der Schilddrüse ähnlich ist. Außer diesen größeren Hohlräumen kommen aber, zum Teil bis in die Substanz des Vorderlappens hinein, auch kleinere kuglige Bläschen vor, die den gleichen Bildungen in der Schilddrüse außerordentlich ähnlich sehen.
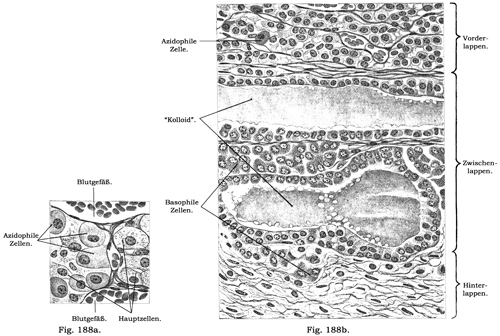
Fig. 188a. Fig. 188b.
Teilbilder aus der menschlichen Hypophyse: a) aus dem Vorderlappen, b) von der Grenze des Vorder-, Zwischen- und Hinterlappens. a 500, b 350mal vergrößert. Technik Nr. 114, S. 290.
Die Grenze des Zwischenlappens gegen Vorder- und Hinterlappen ist nicht vollständig scharf; besonders im Gebiet des Hypophysenstieles ist es nicht leicht, eine Grenze zwischen Vorder- und Zwischenlappensubstanz zu ziehen; dies Verhalten hängt wohl mit der genetischen Zusammengehörigkeit dieser beiden Abschnitte zusammen. Gelegentlich finden sich im Gebiet des Zwischenlappens kleinere oder größere Lymphzellansammlungen.
Der Hinterlappen (Neurohypophyse) besteht größtenteils aus Glia; Nervenzellen sind in ihm nicht sicher nachgewiesen worden. Die Glia ist von Bindegewebssträngen, die Blutgefäße mit sich führen, durchsetzt. Besonders charakteristisch ist die intra- und extrazelluläre Ablagerung eines gelben Pigments, das mit dem Alter zunimmt.
Die Hypophyse ist ein lebenswichtiges Organ; ihre Entfernung führt in kurzer Zeit zum Tode. Sie steht in funktioneller Wechselbeziehung zu der Schilddrüse und zu den Keimdrüsen, deren beider Wegnahme unter lebhafter Vermehrung der eosinophilen Zellen zu einer starken Vergrößerung der Hypophyse führt. Gewisse Erkrankungen (vor allem die Akromegalie, deren sichtbarste Erscheinungen in einem Wachstum der vorstehenden Teile des Gesichtes, der Hände und Füße und in einer Herabsetzung der Genitalfunktion bestehen) werden auf eine Überfunktion der Hypophyse zurückgeführt. Dabei sind es hauptsächlich der Vorder- und Zwischenlappen, auf deren Erkrankung die Störungen beruhen. Über die Bedeutung des Hinterlappens sind wir nicht so gut unterrichtet.
Welche Abflußwege das anzunehmende Hypophysensekret benutzt, um seine Wirkungen zu entfalten, ist ebensowenig klargestellt, wie dies bei anderen innersekretorischen Organen der Fall ist.
b) Epiphysis.
Die Epiphysis (Corpus pineale, Zirbel) ist aus einer Falte der primitiven Hirnwand hervorgegangen.
Sie bietet in allen Teilen ein ziemlich gleichartiges Aussehen dar; außer Neuroglia und einem Bindegewebsgerüst finden sich dicht beieinanderliegend, im Alter allmählich an Zahl vermindert, rundliche Gruppen von Zellen, die nur wenig anscheinend substanzarmes Zytoplasma und einen großen Kern besitzen.
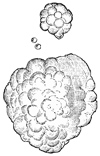
Fig. 189.
Hirnsand aus der Zirbel einer 70jähr. Frau. 50mal vergr. Technik Nr. 115, S. 290.
In der Zirbel sowie in den Telae chorioideae finden wir fast regelmäßig Hirnsand, Acervulus cerebri 5 µ bis 1 mm große, rundliche oder tropfsteinähnliche Konkretionen, die frisch eine unebene, maulbeerartige Oberfläche (Fig. 189) zeigen, während an in Glyzerin oder in Balsam konservierten Präparaten eine deutliche konzentrische Schichtung sichtbar wird. Sie bestehen aus einer organischen Grundlage und kohlensaurem Kalk nebst phosphorsaurer Magnesia und sind zuweilen von einer dicken bindegewebigen Hülle umgeben.
In der Zirbel des Rindes sind quergestreifte Muskelfasern gefunden worden, woraus auf einen Einfluß der Epiphyse auf die Verteilung des Liquors geschlossen worden ist.
Über die Bedeutung der Epiphyse sind wir noch mangelhaft unterrichtet; auch sie scheint aber in die Stoffwechselvorgänge regulierend einzugreifen. Gewisse Einflüsse auf die Entwicklung der Keimdrüsen werden der Epiphyse auf Grund von Beobachtungen an Menschen und Tieren zugeschrieben.
III. Gl. suprarenalis und verwandte Bildungen.
Die Nebenniere besteht aus zwei genetisch und funktionell verschiedenen Abschnitten, der Rinde und dem Marke (siehe Fig. 190). Die Rinde, die in selbständiger Bildung dem embryonalen Peritonealepithel (nach anderen der Urniere) entstammt, entspricht den über eine größere Länge des Körpers verbreiteten Interrenalorganen niederer Tiere; beim Menschen finden sich (z. B. in der Niere, versprengt im Retroperitonealraum, im Bindegewebe der inneren Genitalorgane) sogenannte akzessorische Nebennieren, die als Reste einer ursprünglich weiteren Ausdehnung der Rindensubstanz zu betrachten sein dürften.
Das Mark (Adrenalsystem) bildet sich aus den Anlagen der sympathischen Ganglien, in denen ein Teil der Zellen die für dieses System typische Beschaffenheit (sogenannte chromaffine Zellen) annimmt. Auch das Adrenalsystem ist nicht auf die Nebenniere beschränkt. Besonders in embryonaler und kindlicher Zeit besitzt es in den sogenannten Paraganglien (zu beiden Seiten der Bauchaorta) und vielen kleineren Substanzgruppen, ferner eingelagert in fast alle sympathischen Ganglien, eine große Verbreitung (s. S. 262).
In der Nebenniere sind die beiden genetisch zu trennenden Bestandteile zu einem von einer Kapsel umschlossenen Organ zusammengefügt. Die Rindensubstanz (Interrenalorgan) ist von faserigem Bruche, frisch (infolge ihres Lipoidgehaltes) von gelber Farbe, die beim Erwachsenen an der Grenze gegen das Mark in einen dunkelbraunen Ton übergeht; hier findet sich eine mit dem Alter zunehmende Pigmentanhäufung in den Zellen. Die Zellen der Rindensubstanz besitzen einen Durchmesser von ca. 15 µ und enthalten Tröpfchen einer fettartigen Substanz, nach deren Entfernung (in den üblichen durch Alkohol und Xylol geführten Präparaten) das Zytoplasma als wabiges Gerüst zurückbleibt (Fig. 192).
Die fettartigen Substanzen der Rindenzellen bestehen teils aus Neutralfett, zum Teil aus kompliziert zusammengesetzten Cholesterinverbindungen, die sich auch färberisch von Neutralfetten unterscheiden lassen.
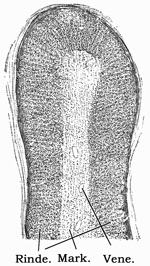
Fig. 190.
Stück eines Querschnittes der Nebenniere eines Kindes. 15mal vergrößert. Technik Nr. 116, S. 290.
Die inneren Schichten der Rinde (sogenannte Zona reticularis, siehe unten) enthalten regelmäßig, mit dem Alter zunehmend, ein Abnutzungspigment, das die dieser Schicht eigentümliche Dunkelfärbung hervorruft (Fig. 191).
Die Rindenzellen bieten den Blutgefäßkapillaren eine große Oberfläche dar; sie sind in Strängen angeordnet, die kein Lumen enthalten, und sitzen der Blutkapillarwand mittels eines sehr zarten Bindegewebsgerüstes auf, ohne daß eine Membrana propria als Grenzscheide vorhanden ist. Das Bindegewebsgerüst zieht sich zwischen den einzelnen Zellen hin (Fig. 192).
Die Gruppierung der Rindenzellen ist schichtenweise verschieden, so daß nach diesem Merkmal drei Schichten zu erkennen sind (Fig. 191).
I. Zona glomerulosa; sie grenzt die Rinde nach der Kapsel zu ab, ihre Zellen sind zu rundlichen Haufen angeordnet.
II. Zona fasciculata, der umfangreichste Rindenabschnitt, in dem die Zellen radiär stehende Säulchen bilden.
III. Zona reticularis, die innerste Rindenschicht, die die meist unregelmäßige Grenze gegen das Mark darstellt. Die Netzbildung der Zellbalken, die Pigmentierung der Zellen sind ihre Hauptmerkmale.
Die oben erwähnten akzessorischen Nebennieren besitzen den gleichen Aufbau wie die Nebennierenrinde.
Die Marksubstanz (Adrenalorgan) ist keineswegs gleichmäßig in der Nebenniere verteilt; häufig sind Querschnitte anzutreffen, denen die Marksubstanz vollständig fehlt. An anderen Stellen der Nebenniere ist sie dann zu größeren Haufen angeordnet. So kommt es, daß man in einem Bilde (Fig. 192) Rinden- und Markbestandteile dicht an die sogenannten Markvenen (siehe unten) angrenzen sehen kann.
Die Zellen der Marksubstanz — das gleiche gilt für die oben erwähnten anderen Teile des Adrenalsystems — sind chromaffin (phäochrom[107]), besitzen ein sehr schwer zu fixierendes Zytoplasma, das mit feinen, die Chromreaktion (siehe unten) in verschiedenem Grade gebenden Körnchen angefüllt ist. Die Markzellen sind (im Gegensatz zu den Rindenzellen) zu unregelmäßigen Haufen und Strängen angeordnet, zwischen die kein Bindegewebe eindringt (Fig. 192).
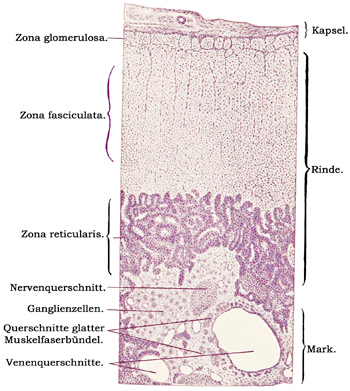
Fig. 191.
Stück eines Querschnittes der menschlichen Nebenniere. 47mal vergrößert. Technik Nr. 117, S. 290.
Die Zellkörnchen färben sich gelblich bis braun, wenn man sie kurz nach dem Tode mit Chromsäure enthaltenden Flüssigkeiten behandelt; mit Eisenchlorid läßt sich an ihnen eine Grünfärbung erzielen. Die gleichen Reaktionen gibt das auch künstlich darstellbare Adrenalin; es liegt deshalb nahe, die „Chromaffinität“ als Adrenalinreaktion aufzufassen.
Die Kapsel der Nebennieren sendet feine Fortsetzungen in das Innere des Organes; sie enthält in der Nähe der Blutgefäße elastische Fasern, die auch im Marke, nicht aber, oder nur sehr spärlich, in der Rinde vorkommen.
Die Arterien der Nebenniere teilen sich schon in der bindegewebigen Kapsel in viele kleine Äste, welche in die Rindensubstanz eindringen und dort in der Z. glomerulosa und fasciculata ein langmaschiges Kapillarnetz bilden. In der Z. reticularis wird das Kapillarnetz rundmaschig, ein Verhalten, das es auch in der Marksubstanz beibehält. Dort sammeln sich aus ihm die Venen, von denen die größeren von Längszügen glatter Muskelfasern begleitet werden. Noch innerhalb der Marksubstanz vereinen sich die Venen zur Hauptvene, der Vena suprarenalis.
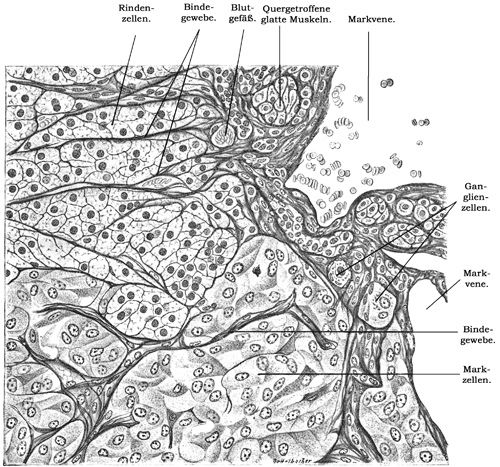
Fig. 192.
Aus der Nebenniere des Menschen. 320mal vergrößert. Technik Nr. 117, S. 290.
Das Mark besitzt auch kleine Eigenarterien, die, durch die Rinde dringend sich erst im Marke in ein Kapillarsystem auflösen.
Die zahlreichen, meist marklosen Nerven (beim Menschen ca. 33 Stämmchen) kommen vorzugsweise aus dem Plexus coeliacus und dringen mit den Arterien durch Kapsel und Rinde bis in die Marksubstanz. Während dieses Verlaufes werden an die Kapsel einige Ästchen abgegeben, die dort ein Geflecht bilden; aus diesem senken sich in die Rinde, zwischen die Zellgruppen der Zona glomerulosa und fasciculata, feine Ästchen, welche auf der Oberfläche der Zellgruppen enden, ohne zwischen die einzelnen Zellen einzutreten. Reichlicher ist das Nervengeflecht der Zona reticularis, welches durch Verästlung direkt durch die Rinde herabsteigender Fasern entsteht, aber auch hier nur Zellgruppen umfaßt. In der Marksubstanz ist das Nervengeflecht außerordentlich dicht, jede einzelne Zelle ist von Nervenfasern umgeben. In der Marksubstanz (selten in der Rinde) finden sich auch hier und da Gruppen von sympathischen Ganglienzellen. Ein Teil der Nerven endet in der Wandung der Blutgefäße.
Unsere Kenntnisse über die Funktion der Nebenniere lassen noch kein klares Bild entwerfen. Sicher ist die Nebenniere ein lebenswichtiges Organ, das maßgebend in den Stoffwechsel eingreift. Ihre vollständige Entfernung bewirkt bei Tieren unter schweren Vergiftungserscheinungen in wenigen Tagen den Tod. Das im Marke nachweisbare Adrenalin ist eine noch in äußerst starken Verdünnungen wirksame Substanz. Wahrscheinlich ist die Bedeutung des Markes in der Produktion des das gesamte sympathische Nervensystem erregenden Adrenalins zu suchen. Über die Funktion der Nebennierenrinde haben wir noch keine befriedigende Vorstellung. Die in ihr massenhaft abgelagerten Lipoide scheinen von außen her aufgenommen zu sein; welche Bedeutung dieser Lipoidspeicherungsprozeß besitzt, ist unbekannt.
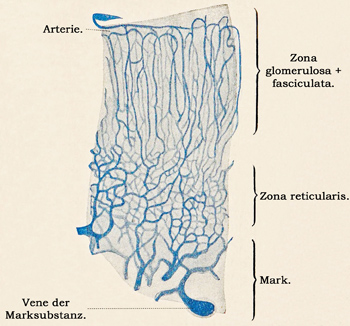
Fig. 193.
Stück eines Schnittes durch eine injizierte Nebenniere eines Kindes. 50mal vergrößert.
Technik.
Nr. 110. Allgemeine Vorschriften zur Herstellung von Organpräparaten. In vielen Fällen handelt es sich darum, übersichtliche Bilder von der Zusammensetzung eines Organes zu erhalten. Hierzu müssen Fixationsmittel verwandt werden, die auch größere Stücke gut durchfixieren: Zenkersche Flüssigkeit, Müller-Formol (s. S. 16). In diesen Fällen empfiehlt es sich, die Blöcke in Paraffin oder Zelloidin einzubetten (s. S. 22); nur zur raschen Orientierung genügen Freihandschnitte mit dem Rasiermesser.
Gute, schneller zu erreichende Ergebnisse gibt auch die Fixation mit Formalin (S. 14) mit nachfolgender Anfertigung von Gefrierschnitten (S. 21).
Die Schnittrichtung ist besonders wichtig bei Organen, deren Bau schichtenweise verschieden ist (Hohlorgane, Nebenniere usw.); hier wählt man am besten genaue Quer- oder Längsschnitte.
Als Färbemethoden geben die beste allgemeine Übersicht: Hansens Hämatoxylin und Eosin (s. S. 41), Hansens Hämatoxylin, van Giesons Gemisch (S. 42), Hämatoxylin, Eosin, Phosphormolybdänsäure, Wasserblau (Nr. 20, S. 116).
Die beiden zuletzt genannten Methoden heben das Bindegewebe gut hervor. Zur Färbung der elastischen Fasern verwende man die Weigertsche Elastikafärbung (S. 35).
Die Schnittdicke betrage durchschnittlich 10 µ.
Auf Spezialmethoden ist in den einzelnen Nummern verwiesen.
Nr. 111. Schilddrüse. Man fixiert in Zenker (weiter s. S. 16) und verfährt nach Nr. 110. Dicke Schnitte betrachte man in Glyzerin, woselbst die mit Kolloid gefüllten Lymphgefäße oft deutlich hervortreten.
Nr. 112. Das obere Epithelkörperchen findet sich an der Eintrittsstelle der Art. thyreoid. inf. in die Schilddrüse, an der hinteren Kante des Seitenhornes, an dessen unterem Pol (oder tiefer unten) das untere Körperchen liegt. Manchmal fehlt eines. Die Epithelkörperchen sind am leichtesten an frischen Präparaten zu finden, sind von minderer Transparenz als die Lymphknötchen, von festerer Konsistenz als Fettläppchen. Sicheren Entscheid gibt die mikroskopische Untersuchung. Fixation: Formol-Alkohol (S. 15), Einbettung in Paraffin, Färbung nach Nr. 20, S. 116.
Nr. 113. Thymus. Man fixiere den Thymus von Feten, neugeborenen und älteren Kindern in Kalibichromat-Essigsäure (S. 15); weiter nach Nr. 110. (Fig. 184 ist nur mit Hämatoxylin gefärbt.) Man verwechsle die Gefäßquerschnitte, deren Lumina beim Heben und Senken des Tubus sich verrücken (wenn sie nicht genau quergeschnitten sind), nicht mit den konzentrisch gestreiften Hassalschen Körpern.
Nr. 114. Hypophysis. Fixation: Formol-Alkohol; die Paraffinschnitte (7,5-10 µ) werden in Hämatoxylin und Eosin (S. 32 u. 41) oder in Hämatoxylin und v. Giesons Pikrofuchsin (S. 42) gefärbt. Die azidophilen Zellen sind bei der zweiten Methode gelb, die basophilen dunkelgrau gefärbt.
Nr. 115. Hirnsand. Man zerzupfe die Zirbel in einem Tropfen Kochsalzlösung. Ist viel Hirnsand vorhanden, so kann man beim Zupfen schon das Knirschen der Körnchen hören und die größten auch mit unbewaffnetem Auge wahrnehmen. Betrachten mit schwacher Vergrößerung ohne Deckglas (Fig. 189); die Körnchen sind nicht immer rund, sondern oft länglich zackig. Dann streife man die größten Körnchen mit der Nadel zur Seite, bedecke einige kleine mit dem Deckglase und lasse 2-3 Tropfen Salzsäure zufließen (S. 47). Die scharfen Konturen der Körnchen verschwinden alsbald unter Entwicklung von Blasen.
Nr. 116. Nebenniere, Übersichtsbild. Man fixiere die ganze, möglichst frische Nebenniere in etwa 200 ccm Kalibichromat-Essigsäure usw. (S. 15). Ungefärbte Querschnitte in verdünntem Glyzerin konservieren (Fig. 190), worin die braune Farbe der chromaffinen Zellen am besten sichtbar ist.
Nr. 117. Zum Studium des feineren Baues der Nebenniere werden Stücke (von 1-2 cm Seite) des möglichst frischen Organs in ca. 100 ccm Müllerscher oder Zenkerscher Flüssigkeit fixiert usw. (S. 16). Die feinen Paraffinschnitte werden mit Hansenschem Hämatoxylin gefärbt usw. (S. 32, Fig. 191).
Sehr schöne Bilder geben auch Präparate, die nach Technik Nr. 20, S. 116 gefärbt sind (Fig. 192).
Nr. 118. Zur Darstellung der Nerven ist das Einlegen von Nebennierenstückchen in Golgi-Mischung (s. S. 5) auf 6-8 Tage, das Einlegen in 0,75% Silberlösung auf 2-3 Tage, eventuell öftere Wiederholung dieser Prozedur, zu empfehlen.
V. Verdauungsorgane.
Schleimhaut.
Die innere Oberfläche des gesamten Darmtraktus, der Respirationsorgane sowie gewisser Bezirke des Urogenitalsystems und einzelner Sinnesorgane ist von einer weichen, feuchten Haut, der Schleimhaut, Membrana mucosa, überzogen. Dieselbe besitzt gegen das Lumen einen Epithelüberzug, der je nach der Aufgabe des von der Schleimhaut ausgekleideten Organes sehr verschieden gebaut sein kann; an vielen Stellen sind aus diesem Epithel Drüsen entstanden, die sich entweder im Bereich der Schleimhaut vorfinden oder mit ihr nur durch Ausführungsgänge in Verbindung geblieben sind. Das vielerorts mit besonderen Einrichtungen (speziell im Verhalten der Blut- und Lymphgefäße) versehene Bindegewebe der Schleimhaut bezeichnen wir als Tunica propria (Stroma). Dieses geht bei solchen Schleimhäuten, die unverschieblich mit der Unterlage (besonders mit Knochen) verbunden sind, unmittelbar in das die Verbindung herstellende Bindegewebe über, das wir als Tela submucosa bezeichnen. Wo die Schleimhaut auf der Unterlage stark verschieblich ist, ist dieses Bindegewebe sehr locker gebaut; auch besitzen solche Schleimhäute in der Regel als basalen Abschluß eine schmächtige Lage glatter Muskulatur (Tunica muscularis mucosae), die der Schleimhaut eine Eigenbeweglichkeit verleiht.
Die Schleimhaut setzt sich also in diesen Fällen zusammen aus:
I. Tunica epithelialis,
II. Tunica propria,
III. Tunica muscularis mucosae.
A. Kopfdarm.
I. Mundhöhle.
1. Die Schleimhaut der Mundhöhle.
Die Schleimhaut der Mundhöhle besitzt keine Eigenbeweglichkeit und besteht somit nur aus Epithel und Tunica propria. Das Epithel, Verletzungen leicht ausgesetzt, ist typisches geschichtetes Plattenepithel (S. 81), dessen oberste Zellen beständig als platte Schüppchen abfallen und dem Speichel zugemengt werden. Die Tunica propria wird von reichlich mit elastischen Fasern untermengten Bindegewebsbündeln gebildet, welche sich in den verschiedensten Richtungen durchflechten. Die Bündel der obersten Lagen sind sehr fein und bilden ein dichtes, fast homogen aussehendes Filzwerk. Auf der Oberfläche der Tunica propria stehen zahlreiche, meist einfache Papillen (Fig. 194), deren Höhe in den einzelnen Bezirken der Mundhöhle sehr verschieden ist. Die höchsten (0,5 mm hohen) Papillen finden sich am inneren Lippenrande (wo sie beim Neugeborenen förmlich Zotten bilden) und am Zahnfleische. Die Tunica propria geht ohne scharfe Grenze in die Submukosa über, welche aus etwas breiteren Bindegewebsbündeln besteht; elastische Fasern sind hier spärlicher vertreten. Die Submukosa ist meist locker an die Wandungen der Mundhöhle angeheftet, nur am harten Gaumen und am Zahnfleische ist sie fester und hier innig mit dem Periost verbunden. Die Submukosa ist die Trägerin zahlreicher kleiner Speicheldrüsen von 1-5 mm Größe.
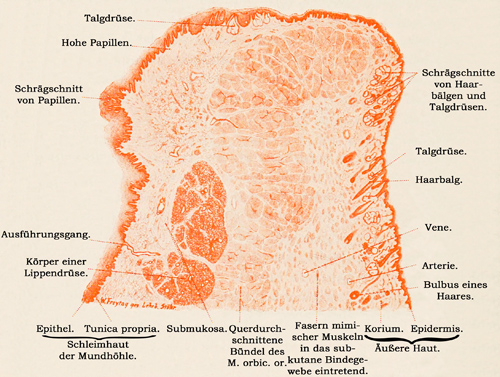
Fig. 194.
Senkrechter Schnitt durch die Unterlippe eines 19jährigen. 10mal vergr. Technik Nr. 110, S. 289.
Ihr Hauptausführungsgang ist an seinem unteren Ende etwas erweitert und im größten Teile seiner Länge mit geschichtetem Pflasterepithel ausgekleidet; die aus ihm hervorgehenden Äste und Zweige tragen geschichtetes (die größeren) oder einfaches Zylinderepithel (die kleineren Äste). Nicht selten nimmt der Hauptausführungsgang die Ausführungsgänge kleiner akzessorischer Drüschen auf. (Über den feineren Bau der Endstücke siehe nächstes Kapitel.)
Am Lippenrande und an der Wangeninnenfläche kommen auch Talgdrüsen (ohne Haare) (siehe Kapitel „Haut“) vor, die sich meist erst während der Pubertät entwickeln.
Die reichlichen Blutgefäße der Mundschleimhaut sind in zwei, flächenhaft ausgebreiteten Netzen angeordnet, von denen das eine, gröbere, in der Submukosa, das andere, feinere, in der Tunica propria liegt. Von letzterem steigen kapillare Schlingen in die Papillen. Die Lymphgefäße bilden gleichfalls in die Submukosa eingebettete (weite) und in der Tunica propria gelegene (enge) Netze. Die markhaltigen Nerven bilden in der Submukosa ein weitmaschiges Netz, von dem aus viele, sich verästelnde Fasern in die Tunica propria emporsteigen. Hier enden dieselben entweder in Netzen, Geflechten, in Endkolben und Tastkörperchen (s. S. 265) oder sie dringen unter Verlust ihrer Markscheide als marklose Fasern in das Epithel ein, wo sie nach wiederholten Teilungen frei aufhören.
2. Die Drüsen der Mundhöhle.
Der während der Nahrungsaufnahme in die Mundhöhle ergossene Speichel ist das Produkt der drei großen und der zahlreichen kleinen Speicheldrüsen der Mundhöhle. Er dient sowohl zur Herstellung eines geformten Bissens, wobei der Muzingehalt[108] eine große Rolle spielt, als zur Ausspülung und Reinigung aller feinen Spalten der Mundhöhlenoberfläche. Neben diesen mechanischen Aufgaben besitzt der Speichel Fermente, die für die Zerlegung mancher Nährstoffe wichtig sind. Der Speichel mancher Drüsen (besonders der Parotis und der an den Geschmackspapillen liegenden kleinen Drüsen) ist ganz muzinfrei und ein dünnflüssiges, an Eiweiß und Ferment reiches Sekret; andere Speicheldrüsen wieder liefern sehr muzinreiche Sekrete (so die Sublingualis des Menschen). In Übereinstimmung damit finden wir in den Speicheldrüsen zwei Arten von sekretbereitenden Zellen; beide Arten gehören zum merokrinen Typus der Drüsenzellen (s. S. 85): 1. Zellen, die ein eiweißreiches Sekret liefern, Eiweiß- oder seröse Zellen, 2. Zellen, deren Sekret aus Schleim besteht, Schleim, oder muköse Zellen.
Die serösen Zellen sind, frisch untersucht, durch viele, stark lichtbrechende Körnchen charakterisiert. An fixierten Präparaten erscheinen sie je nach dem Funktionszustande bald dunkler, von geringem Umfang („sekretleeres“ Stadium), bald etwas heller und größer („sekreterfüllt“) (vgl. Fig. 29, S. 83). Der kugelige Kern ist nicht ganz in der Zellmitte, meist näher der Zellbasis gelegen.
Die mukösen Zellen sind in frischem Zustande viel weniger lichtbrechend.
Als typische Schleimzellen möchte ich diejenigen Schleimzellen bezeichnen, deren Zellkörper zum größten Teil zur Sekretsammelstelle geworden ist und in verschiedenen Funktionsstadien diese Stelle in ihrem Umfang im wesentlichen lange beibehält. Nicht alle Schleimzellen teilen diese Eigenschaft, so ist die Sammelstelle der menschlichen Glandulae olfactoriae ganz klein und scheint sich unter normalen Verhältnissen nicht viel zu vergrößern; an den Schleimzellen des Magenepithels, ferner an denjenigen der Katzenlingualdrüsen schwankt der Umfang der Sammelstelle je nach dem Funktionsstadium ganz bedeutend.
An fixierten Präparaten erscheinen die Schleimzellen hell, der Kern liegt bei sekretgefüllten Zellen abgeplattet an die Zellbasis gedrückt und wird bei Entleerung des Sekrets nur oval, ohne Lage und Stellung im wesentlichen zu verändern. Der gebildete Schleim läßt sich durch viele Anilinfarbstoffe, ferner durch Delafields Hämatoxylin und durch Mucikarmin färben (vgl. z. B. Fig. 30, S. 84).
Nur wenige Mundhöhlendrüsen des Menschen enthalten ausschließlich eine Zellenart; dazu gehört die Parotis, deren Endstücke lediglich von serösen Drüsenzellen gebildet werden, ferner die in der Gegend der Papilla foliata und der Papillae vallatae gelegenen „serösen Zungendrüsen“. Ausschließlich typische Schleimzellen enthalten die Drüsen der Vorderfläche des weichen und des harten Gaumens, ferner die „Schleimdrüsen“ der menschlichen Zungenwurzel. Alle anderen Mundhöhlendrüsen sind „gemischte Drüsen“, und zwar in der Weise, daß die einen Endstücke nur von serösen Zellen ausgekleidet werden, während andere Endstücke meist Schleimzellen enthalten, zwischen denen einzelne oder Gruppen von serösen Drüsenzellen gelegen sind. Diese letzteren erfahren da, wo sie mit ihren Seitenflächen Schleimzellen berühren, von diesen Eindrücke, ja sie können sogar scheinbar ganz von dem axialen Drüsenlumen abgedrängt werden und bilden so die „Halbmonde“ Ebners.
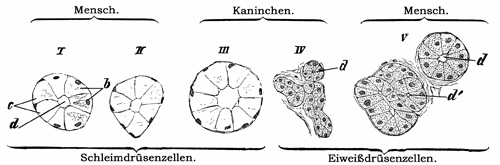
Fig. 195.
Aus Durchschnitten von Zungendrüsen. I Querschnitt mit b sekretleeren Drüsenzellen, c sekretgefüllten Drüsenzellen, d Lumen. II Querschnitt, nur sekretgefüllte Zellen enthaltend. III Querschnitt einer Schleimdrüse. IV Mehrere Acini einer Eiweißdrüse, bei d das sehr kleine Lumen. V Acini mit größerem (d) und kleinerem (d') Lumen. Sämtliche Schnitte 240mal vergr. Technik Nr. 126, S. 359.
Neuere Untersuchungen (M. Heidenhain) legen nahe, die „Halbmonde“ mit den serösen Acini zu identifizieren; sie sind danach Acini, die durch eine schleimige Umwandlung der Schaltstücke (des bei serösen Drüsen an die Endstücke anschließenden Teiles des Ausführungsgangsystems) in die Halbmondform gedrängt sind. Die schleimbereitenden Teile in den Speicheldrüsen wären nach dieser Darstellung gar keine Endstücke wie bisher allgemein angenommen wurde, sondern „verschleimte“ Schaltstücke. Ist diese Vereinfachung in der Auffassung des Speicheldrüsenbaues richtig, so müßte in den „rein mukösen“ Drüsen eine Verschleimung auch des Endstückes angenommen werden.
Die Halbmonde besitzen ebenso wie die serösen Acini zwischenzellige Sekretkapillaren (s. S. 86).
Nicht mit diesen aus ganzen Zellen bestehenden Halbmonden sind die sogenannten Pflügerschen Halbmonde zu verwechseln, welche durch die peripherischen, zytoplasmatischen Abschnitte nicht ganz gefüllter Schleimzellen gebildet werden. Sie finden sich besonders schön an den Lingualdrüsen der Katze. Auch Schrägschnitte durch die Membrana propria und die ihnen aufliegenden sternförmigen Zellen können den Halbmonden ähnliche Bilder vortäuschen.
Demgemäß teilen wir die Mundhöhlendrüsen ein in rein seröse, in rein muköse und in gemischte Drüsen.
a) Rein seröse Mundhöhlendrüsen.
1. Die serösen Zungendrüsen (Ebnersche Dr.) sind tubulöse zusammengesetzte Drüsen, deren wässeriges („seröses“) Sekret sich durch seinen hohen Eiweißgehalt auszeichnet, daher der Name „Eiweißdrüsen“.
Diese Eiweißdrüsen sind nur auf die Gegend der Papillae vallatae und foliatae beschränkt; das dünnflüssige Sekret dient an dieser Stelle vielleicht der Verdünnung der Schmeckstoffe und der Ausspülung der Gräben.
Die in der Regel in die Furchen zwischen Papille und Wall einmündenden Ausführungsgänge (s. Fig. 224) sind mit einem ein- oder mehrschichtigen (nicht selten flimmernden) Zylinderepithel ausgekleidet; die kleinen Tubuli bestehen aus einer zarten Membrana propria und kurzzylindrischen oder konischen, membranlosen Zellen. Das axiale Lumen der Tubuli ist (besonders bei Tieren) sehr eng (Fig. 195dd') und nimmt noch engere zwischenzellige Sekretkanälchen auf (Fig. 196).
2. Die Ohrspeicheldrüse, Gl. parotis, ist eine tubulo-azinöse, zusammengesetzte Drüse und besitzt von allen Mundspeicheldrüsen das am weitesten differenzierte Kanalsystem; die Äste des Ausführungsganges gehen in gut ausgebildete Speichelröhren über, die sich in lange, enge Schaltstücke fortsetzen. Letztere führen in kurze, einfache oder geteilte Endstücke (Acini) (Fig. 197).
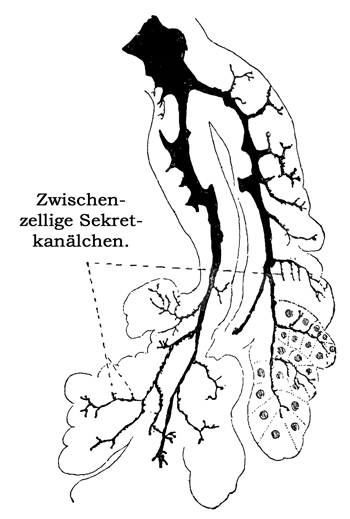
Fig. 196.
Aus einem Schnitt durch die Zungenwurzel der Maus. 240mal vergr. Seröse Drüse, deren Gangsystem durch die Golgische Reaktion geschwärzt ist; man erkennt deutlich den tubulösen Charakter. Die rechte untere Partie der Drüse ist durch Einzeichnen der Zellen schematisch ergänzt. Technik 120, S. 358.
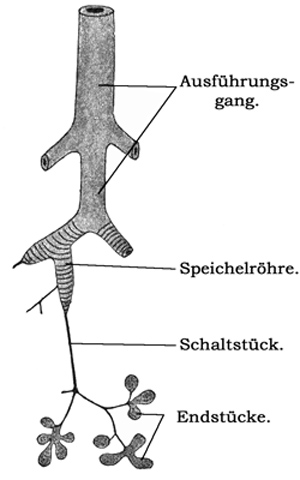
Fig. 197.
Schema der menschlichen Glandula parotis.
Der Ausführungsgang, Duct. parotideus (Stenoni), besteht außen aus Bindegewebe, das nahe dem Epithel starke elastische Fasern enthält, ferner aus einem zweireihigen, hier und da mit Becherzellen untermischtem Zylinderepithel, das in den feineren Ästen allmählich einschichtig wird. Die hohen zylindrischen Epithelzellen der Sekretröhren sind an den Basen deutlich längs gestreift (nach neueren Forschungen sollen auch in den feineren Verzweigungen der Ausführungsgänge, also mündungswärts von den Sekretröhren, die Epithelzellen eine basale Streifung aufweisen), die Schaltstücke (Fig. 199) mit langausgezogenen, oft spindelförmigen Zellen ausgekleidet. Die Endstücke endlich bestehen aus einer zarten Membrana propria mit sternförmigen Zellen und aus kubischen Eiweißdrüsenzellen; diese sind im sekretleeren Zustande klein, trübkörnig, im sekretgefüllten Zustande größer und etwas heller (vgl. S. 84). Frei endende einfache, Sekretkanälchen erstrecken sich vom axialen Lumen zwischen die Drüsenzellen, ohne die Membrana propria zu erreichen.
Das interalveoläre Bindegewebe enthält oft Fettzellengruppen (Fig. 198).
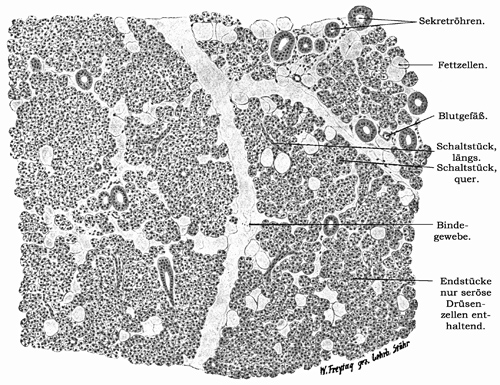
Fig. 198.
Stück eines Schnittes durch die Parotis eines 23jähr. Hingerichteten. 100mal vergrößert. Technik Nr. 121, S. 358. Es sind Teile dreier Läppchen gezeichnet, die etwas auseinandergewichen sind; die nur von spärlichem Bindegewebe ausgefüllten Spalten sind dadurch unnatürlich verbreitert. Charakteristisch: Viele Sekretröhren, nur seröse Drüsenzellen, reichlich Fettzellen.
b) Rein muköse Mundhöhlendrüsen.
Die mukösen Drüsen sind verästelte, tubulöse Einzeldrüsen, welche ein schleim-(muzin-)haltiges Sekret liefern. Diese reinen Schleimdrüsen finden sich beim Menschen nur an der Vorderfläche des weichen Gaumens, am harten Gaumen, entlang der Zungenränder und in größerer Menge an der Zungenwurzel, wo ihre mit einem (zuweilen Flimmerhaare tragenden) Zylinderepithel ausgekleideten Ausführungsgänge nicht selten in die Balghöhle (S. 317) münden. Die Wandung der Tubuli besteht aus einer strukturlosen Membrana propria und zylindrischen schleimbereitenden Drüsenzellen, deren Aussehen nach ihrem jeweiligen Funktionszustande verschieden ist; sie umfassen ein relativ weites Lumen (im Gegensatz zu den serösen Drüsen), was wohl mit der Konsistenz des Sekretes in Verbindung zu bringen ist.
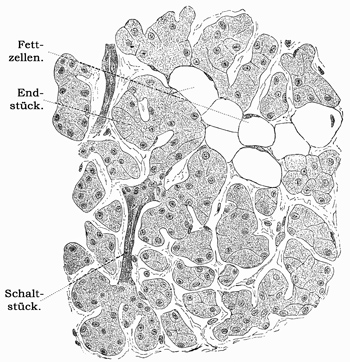
Fig. 199.
Schnitt durch die Parotis eines erwachsenen Menschen. 252mal vergrößert. Die sehr engen Lumina sind an diesem Präparat gar nicht sichtbar. Technik Nr. 121, S. 358.
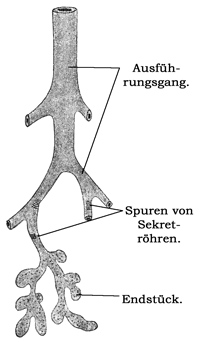
Fig. 200.
Schema der menschlichen Glandula sublingualis.
Im sekretleeren Zustande ist die Zelle schmäler, der an der Basis befindliche Kern queroval (Fig. 195, Ib); im sekretgefüllten Zustande ist die Zelle breiter, der Kern platt an die Wand gedrückt (Fig. 195 Ic, II). Meist zeigt ein und dieselbe Schleimdrüse, ja oft ein und dasselbe Endstück Drüsenzellen in verschiedenen Sekretionsphasen (I), was besonders nach Anwendung von schleimfärbenden Flüssigkeiten deutlich wird. Die rein mukösen Drüsen besitzen keine Sekretkanälchen.
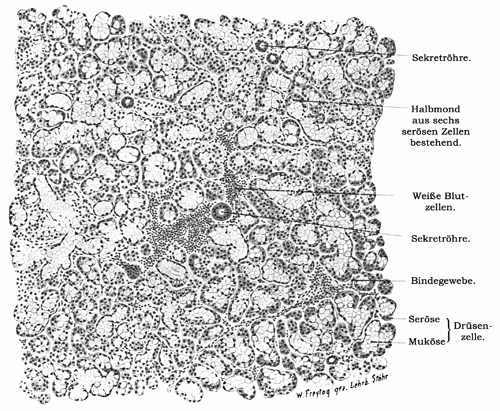
Fig. 201.
Stück eines Schnittes durch die Gl. subling. major eines 23jährigen Hingerichteten. 100mal vergr. Technik Nr. 121, S. 358. Charakteristisch: Wenig Sekretröhren, gleichmäßige Mischung seröser und muköser Drüsenzellen.
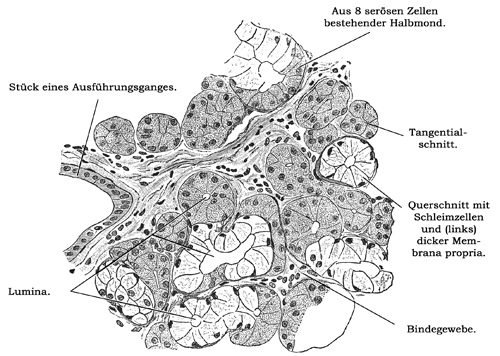
Fig. 202.
Feiner Durchschnitt der Gl. sublingualis major des Menschen. 252mal vergrößert. Der obere Strich von „Lumina“ deutet auf einen Querschnitt durch einen großen Halbmond; dieser hat große Ähnlichkeit mit einem serösen Endstück. Technik Nr. 121, S. 358.
c) Gemischte Mundhöhlendrüsen.
1. Der größere Abschnitt der Unterzungendrüse, die zuweilen fehlende Gl. sublingualis major („monostomatica“), ist eine tubulo-acinöse zusammengesetzte Drüse; ihr Kanalsystem besteht aus einem Ausführungsgang, dessen Äste sich in ganz kurze Sekretröhren fortsetzen; diese gehen direkt in gewundene Endstücke über, welche durch ihr wechselndes Kaliber — sie sind oft ausgebuchtet — charakterisiert sind (Fig. 200). Schaltstücke fehlen.
Der Ausführungsgang, Ductus sublingualis (Bartholini), und seine gröberen Äste werden von zweireihigem Zylinderepithel und Bindegewebe mit reichlichen, elastischen Fasern gebildet. Die feineren Zweige (von 0,05 mm Dicke an) besitzen nur ein einfaches Zylinderepithel; sie setzen sich fort in die Sekretröhren, deren niedrige, zylindrische Zellen nur an wenigen Stellen jene charakteristische Streifung zeigen.
Dieses Ausführungsgangsystem geht in die ihrerseits noch verzweigten Schleimröhren über, die zumeist zu den Endstücken gerechnet, von M. Heidenhain (s. S. 294) als schleimbereitende Schaltstücke aufgefaßt werden. An ihren Enden sitzen gut ausgebildete „Halbmonde“ (s. o.); nur deren seröse Drüsenzellen sind mit zwischenzelligen Sekretkanälchen ausgestattet und gleichen hierin ebenfalls den Acini rein seröser Drüsen. Das zwischen den Endstücken und Läppchen liegende Bindegewebe ist reich an Leukozyten.
Die Gl. sublingualis minor („polystomatica“) besteht aus 5-20 tubulo-acinösen Einzeldrüsen mit vielen Ausführungsgängen und enthält fast ausschließlich muköse Drüsenzellen.
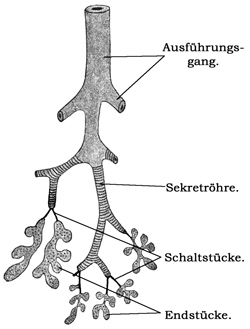
Fig. 203.
Schema der menschlichen Glandula submaxillaris.
2. Das Kanalsystem der Unterkieferdrüse, Gl. submaxillaris, ist weiter differenziert, als das der Gl. sublingualis insofern, als deutliche Sekretröhren und kurze Schaltstücke vorhanden sind. Das hängt damit zusammen, daß sie viel weniger schleimbereitende Anteile besitzt, als die Gl. sublingualis. Die verschleimten Teile besitzen auch hier die Form von Schleimröhren, denen als Kappen die serösen „Halbmonde“ aufsitzen, sind also mehr tubulär gebaut (Fig. 203).
Ausführungsgang (Duct. submaxillaris Whartoni), Sekretröhren, die in den Schnitten ähnlich der Parotis sehr zahlreich sind und die ebenfalls gut ausgebildeten Schaltstücke entsprechen im Bau den entsprechenden Gebilden der Parotis. Die mukösen Anteile sind oft so spärlich, daß sie von Anfängern übersehen werden; wo vorhanden, bieten sie mit ihren endständigen serösen Halbmonden auch bezüglich der Sekretkapillaren das gleiche Bild, wie in den Gl. sublingualis major. Das interstitielle Bindegewebe ist reich an elastischen Fasern.
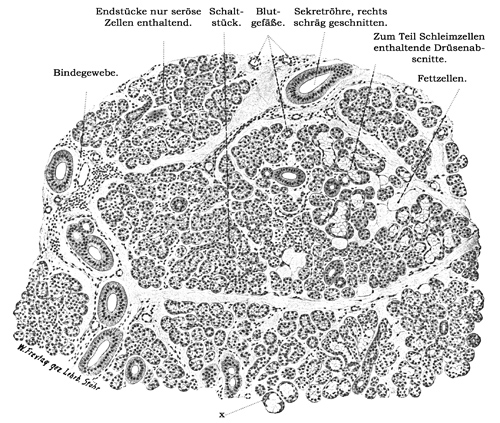
Fig. 204.
Stück eines Schnittes durch die Gl. submaxillaris eines 23jähr. Hingerichteten. 100mal vergrößert. Technik Nr. 121, S. 358. Charakteristisch: Viele Sekretröhren, ungleiche Mischung seröser und muköser Drüsenzellen; letztere fehlen ganzen Läppchen völlig. × Ebners Halbmond.
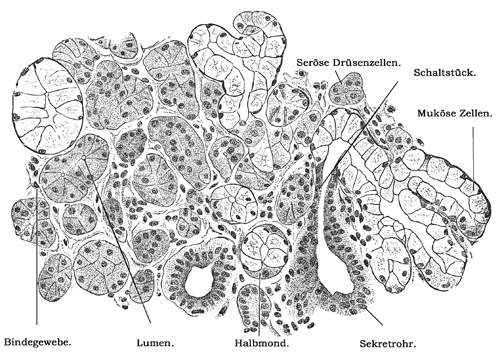
Fig. 205.
Schnitt durch die Glandula submaxillaris eines erwachsenen Menschen. 252mal vergrößert. Technik Nr. 121, S. 358.
3. Den gleichen Bau wie die Gl. submaxillaris zeigen die verästelten Lippendrüsen; auch die Gl. lingualis anterior (Nuhn) und die Gl. buccales und molares sind mit Halbmonden ausgestattet.
In den Mundhöhlendrüsen findet man nicht selten zugrunde gehende Drüsenläppchen, deren durch ein weites Lumen und niedrige Drüsenzellen charakterisierte Endstücke von reichlichem Bindegewebe, zuweilen auch von vielen Leukozyten umgeben sind.
Vorstehende Beschreibung hat nur Gültigkeit für die Mundhöhlendrüsen des Menschen. Bei Säugetieren bestehen oft sehr weitgehende Unterschiede. Mit der Parotis des Menschen stimmen im Bau überein diejenigen von Kaninchen, Hund und Katze, ferner die Gl. submaxillaris des Kaninchens. Der menschlichen Gl. sublingualis und submaxillaris ähneln die gleichen Drüsen von Hund und Katze und auch die Gl. sublingualis des Kaninchens.
Die Blutgefäße der Mundhöhlendrüsen sind sehr ansehnlich entwickelt. Die arteriellen Stämmchen laufen in der Regel neben dem Hauptausführungsgange her und geben von da, sich teilend, zahlreiche Äste ab, welche, zwischen den Drüsenläppchen verlaufend, endlich in die Läppchen selbst eindringen und mit einem dichten Kapillarnetze die Endstücke umspinnen (s. Fig. 31, S. 85). Die Kapillaren liegen dicht an den Drüsenzellen und sind von ihnen nur durch die Membrana propria getrennt (s. auch S. 85). Die größeren Venen verlaufen mit den Arterien.
Lymphgefäßstämmchen verlaufen mit den gröberen Verästelungen der Ausführungsgänge ohne in die Drüsenläppchen einzudringen. Spalträume zwischen den Läppchen und den Endstücken sind als Lymphbahnen beschrieben worden.
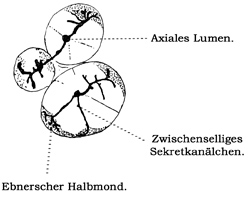
Fig. 206.
Aus einem Durchschnitt durch die Gl. submaxillaris eines Hundes. 320mal vergr. Technik Nr. 120, S. 358.
Die Mundhöhlendrüsen sind reich an Geflechten markhaltiger und hauptsächlich markloser Nerven, welche in ihrem Verlaufe mikroskopische Gruppen von sympathischen Ganglienzellen (besonders in den Wänden der Ausführungsgänge) enthalten. Die feinen, marklosen Nervenfasern verzweigen sich teils in den Wandungen der Blutgefäße, teils bilden sie ein der Membrana propria der Drüsenröhrchen unmittelbar anliegendes („epilemmales“) Geflecht; aus diesem entspringen feine Fädchen, welche die Membrana propria durchbohren und als „hypolemmale“ Fasern in kurze, variköse, einfache oder verästelte Enden auslaufen, welche den Drüsenzellen anliegen.
3. Die Zähne.
Die Zähne des Menschen und der höheren Tiere sind Hartgebilde, welche in ihrem Innern eine mit weicher Masse, der Zahnpulpa, gefüllte Höhle, die Pulpahöhle, einschließen. Der in der Alveole steckende Zahnabschnitt heißt Wurzel und wird durch die Wurzelhaut mit der Alveolenwand verbunden, der freiliegende Teil wird Krone genannt; da, wo Wurzel und Krone aneinander grenzen, befindet sich der Hals des Zahnes, der noch vom Zahnfleische bedeckt wird. Die Hartgebilde bestehen aus drei verschiedenen Teilen: 1. dem Zahnbeine, 2. dem Schmelze mit der Cuticula dentis, 3. dem Zement. Die Anordnung dieser Teile ist folgende: Das Zahnbein, welches die Hauptmasse jedes Zahnes bildet und dessen Form bestimmt, umschließt allein die Pulpahöhle, bis auf das Ende eines feinen, an der Wurzel befindlichen Kanales, durch welchen Nerven und Gefäße zur Pulpa treten. Das Zahnbein wird an der Krone vom Schmelz, an der Wurzel von Zement überzogen, so daß seine Oberfläche nirgends frei zutage liegt (Fig. 207).
Die Anordnung der Bestandteile des Zahnes, sowie die Struktur der Zahngewebe wird am besten verständlich, wenn man ihre Entwicklung kennt, welche wir deshalb zunächst betrachten wollen.
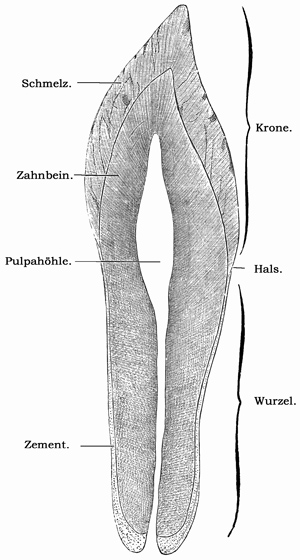
Fig. 207.
Längsschliff eines menschlichen Schneidezahnes. 4mal vergrößert. Technik Nr. 122, S. 358. Das Bild zeigt nur die Anordnung der Hartgebilde.
Entwicklung der Zähne.
Die Entwicklung der Zähne hebt beim Menschen sehr frühzeitig, schon gegen Ende des zweiten Fetalmonates an, und äußert sich zuerst durch eine Wucherung des Epithels der Kieferränder, welches auch in Form eines fortlaufenden Streifens schräg in das unterliegende Bindegewebe hineinwächst. Dieser Streifen, die Zahnleiste („Schmelzkeim“) (Fig. 208A), treibt an seiner lateralen (labialen) Fläche eine der Zahl der Milchzähne entsprechende Anzahl kolbiger Verdickungen (Fig. 208B), während in der Tunica propria ebensoviele Haufen von dicht gedrängten Bindegewebszellen, die jungen Zahnpapillen (Fig. 208B) entstehen (10. Woche). Letztere dringen schräg von der Außenseite (d. i. labial) aus der Tiefe nach innen (d. i. lingual) gegen die Oberfläche gerichtet vor und werden von den Kolben derart umfaßt, daß diese wie Hüte auf den Papillen aufsitzen. So wird jeder Kolben zu einem „Schmelzorgan“. Dabei hat die Zahnleiste eine mehr senkrechte Stellung eingenommen (Fig. 208C). Um diese Zeit ist auch auf den Kieferrändern eine der Länge nach verlaufende Rinne, die Zahnfurche, sichtbar, welche äußerlich die Stelle andeutet, an welcher sich die Zahnleiste in die Tiefe gesenkt hat. Sie verschwindet später wieder. Die anfangs breite Verbindung zwischen Zahnleiste und Schmelzorgan wird durch teilweise Abschnürung (im Schema C durch eine gestrichelte Linie angedeutet) schmäler und ist schließlich nur mehr auf einen dünnen Strang, den Kolbenhals, reduziert. Währenddessen wachsen Schmelzorgan und Papille weiter in die Tiefe, so daß die freie Kante der Zahnleiste nicht einmal mehr bis zur Hälfte des Schmelzorgans herabreicht (Fig. 208D).
Aus dem Schmelzorgan entstehen nur der Schmelz und das Schmelzoberhäutchen des fertigen Zahnes; alles übrige (Dentin, Pulpa, Zement, Wurzelhaut) wird von der Zahnpapille und ihrer ebenfalls aus embryonalem Bindegewebe bestehenden Umgebung gebildet.
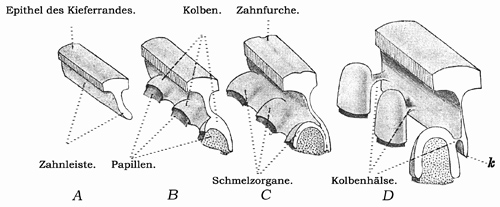
Fig. 208.
Schematische Darstellung der ersten Vorgänge der Zahnentwicklung, die Bildung dreier Zähne darstellend; jede vorderste (im Bilde rechte) Zahnanlage ist durchschnitten — die Schnittfläche der Papillen punktiert — gezeichnet. k freie Kante der Zahnleiste.
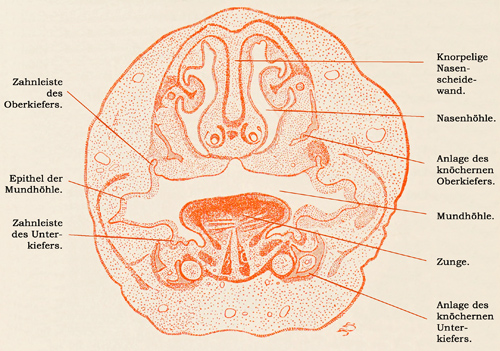
Fig. 209.
Frontalschnitt des Kopfes eines 4 cm langen Schafembryo. 15mal vergrößert. Technik Nr. 123, S. 359.
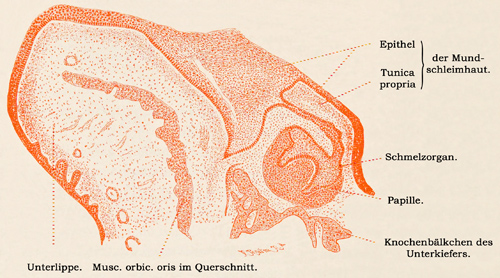
Fig. 210.
Querschnitt des Unterkiefers eines 4monatigen menschl. Fetus. 42mal vergr. Technik Nr. 123, S. 359.
Unterdessen erfahren die Elemente des Schmelzorganes ihre weitere Ausbildung, und zwar werden die der Papille aufsitzenden, inneren Zellen hohe Zylinder; sie heißen innere Schmelzzellen (Fig. 211), ihre innere, der Papille zugewandte Oberfläche ist mit einem Kutikularsaum versehen; die peripherischen Zellen (Fig. 211) werden dagegen immer niedriger (Fig. 214) und gestalten sich schließlich zu abgeplatteten Elementen: äußere Schmelzzellen; die zwischen beiden liegenden Zellen werden durch reichliche Vermehrung der Interzellularsubstanz zu sternförmigen, miteinander anastomosierenden Zellen und bilden die Schmelzpulpa (Fig. 214). Diese vermittelt den Zutritt der für die Schmelzbildung notwendigen Substanzen (vor allem Kalksalze); in dieser Zeit findet sich an der äußeren Oberfläche des Schmelzorgans ein dichtes Blutgefäßnetz, das den regen Stoffwechsel des Schmelzorgans durch Zu- und Abfuhr unterstützt. Vom Umschlagsrande des Schmelzorgans, d. h. von der Stelle, an welcher die innere Schmelzzellenlage in die äußere umbiegt, findet ein weiter in die Tiefe schreitendes Wachstum statt, bis der Umschlagsrand das untere Ende der Zahnanlage erreicht hat. Das Schmelzorgan bildet gewissermaßen die Gußform, die Matrize, in der sich der Zahn entwickelt; die Formbestimmung des späteren Zahnes ist die erste Funktion des Schmelzorgans, die zweite ist die Schmelzbildung.
Schmelzbildner ist nur die Schmelzmembran, d. i. die obere, die Zahnkrone umhüllende Partie der inneren Schmelzzellen; nur diese oberen Zellen heißen „Ameloblasten“. Jeder derselben liefert eine nachträglich (zuerst von der Zahnbeinseite her) verkalkende Substanz, welche zu je einem Schmelzprisma wird, das mit seinem Nachbarn durch eine anfangs sehr reichlich vorhandene Kittsubstanz verbunden ist. Im weiteren Verlauf der Entwicklung verdicken sich die Schmelzprismen auf Kosten der Kittsubstanz.
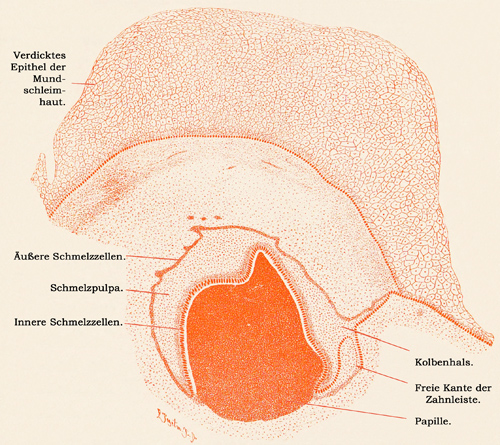
Fig. 211.
Stück eines Querschnittes des Oberkiefers eines 5monatigen menschlichen Fetus. 42mal vergrößert. Der zwischen den inneren Schmelzzellen und der Papillenoberfläche gelegene helle Streifen ist das Prädentin (S. 306). Technik Nr. 123, S. 359.
Die untere, die Zahnwurzel umfassende Partie der inneren Schmelzzellen hat nichts mit der Schmelzbildung zu tun; diese Zellen werden niedriger und legen sich, da auch dort die Schmelzpulpa bald fehlt, direkt an die äußeren Schmelzzellen an. Die beiden Lagen heißt man hier Epithelscheide der Zahnwurzel (Fig. 213).
Kurz bevor die Bildung des Schmelzes begonnen hat, am Ende des 4. Fetalmonates, wachsen die oberflächlichen Zellen der Zahnpapille zu langen Gebilden, den Odontoblasten heran, die eine chemisch dem Kollagen nahestehende Grundsubstanz, das „Prädentin“ (Fig. 211), liefern, welches von Vorstufen leimgebender Fibrillen (v. Korffsche Fasern), Fortsätzen der Odontoblasten durchsetzt wird. In diesem bald körnig werdendem Prädentin entwickeln sich reichliche, leimgebende, tangential verlaufende (S. 309) Fibrillen; beide zusammen bilden das Zahnbein, das anfangs unverkalkt ist, später verkalkt und die Zahnfasern (S. 313) einschließt (Fig. 214). Das weitere Wachstum des Zahnbeines erfolgt durch Bildung neuer Schichten von der Innenfläche her. Wie später in der chemischen Zusammensetzung, so hat auch in der Entstehung das Zahnbein weitgehende Analogien mit den Knochen. Bei beiden bildet sich unter dem Einfluß von plasmodial verbundenen Zellen die Interzellularsubstanz (die von Anfang an Fibrillen, Kittsubstanz und Hohlräume enthält); nur werden beim Dentin die Odontoblasten nicht ganz eingeschlossen, sondern der zur Zahnfaser werdende Fortsatz verlängert sich mit dem Dickerwerden des Dentins; demnach ist das Dentin scheinbar zellenfrei, während die Osteoblasten jeweils zu Osteozyten werden.
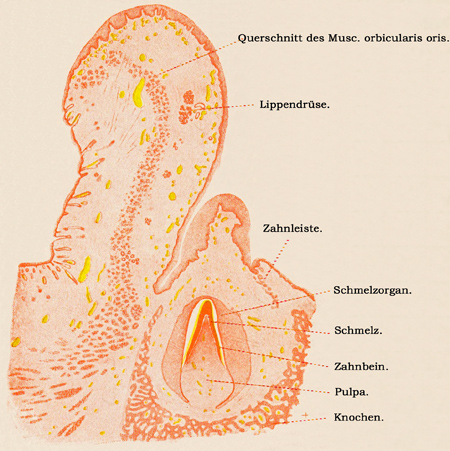
Fig. 212.
Senkrechter Schnitt durch Lippe und Kiefer eines 61/2monatigen menschlichen Fetus. 9mal vergrößert. Technik Nr. 123, S. 359.
Sobald das erste Zahnbein gebildet ist, erfolgt eine Rückbildung der Epithelscheide, indem Bindegewebe des Zahnsäckchens (s. unten) zwischen die Epithelzellen eindringt. Diese Rückbildung beginnt zuerst an der unteren Schmelzgrenze, so daß der tiefste Teil der Epithelscheide seinen Zusammenhang mit dem Schmelzorgan verliert. Mit vollendetem Wachstum des Zahnes ist auch der letzte Rest der Epithelscheide verschwunden.
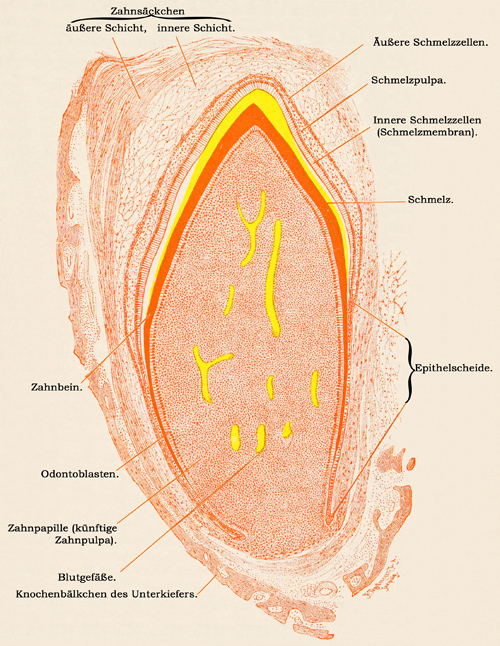
Fig. 213.
Längsschnitt durch einen jungen Milchzahn eines neugeborenen Hundes. 42mal vergrößert. Technik Nr. 123, S. 359.
Schon vor der Bildung von Schmelz und Zahnbein hat sich die Verbindung der Zahnleiste mit der Oberfläche gelöst (im Schema Fig. 208D angedeutet). Reste der Zahnleiste sind noch im Zahnfleisch neugeborener Kinder zu finden und irrtümlicherweise für Drüsen („Glandulae tartaricae“) gehalten worden.
Das in der Umgebung der ganzen Zahnanlage befindliche Bindegewebe ordnet sich (etwa in der 20. Woche) zu einer dichteren Haut, dem Zahnsäckchen, an dem man späterhin eine innere, mehr lockere und eine äußere, dickere Lage unterscheiden kann (Fig. 213). Cuticula dentis und Zement entstehen erst nach der Geburt, kurz vor Durchbruch des Zahnes; die Kutikula dadurch, daß die Kutikularsäume der inneren Schmelzzellen zu einer festen, homogenen Haut zusammenfließen; das Zement ist ein Produkt des Zahnsäckchens, das zum Teil als Wurzelhaut, zum Teil (weiter peripherisch) als Alveolarperiost fortbesteht. Beim Durchbruch gehen die Schmelzzellen und die Schmelzpulpa spurlos zugrunde.
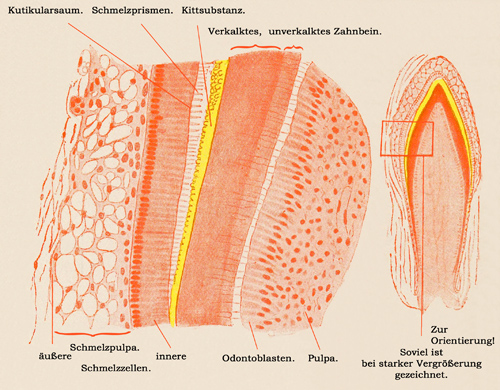
Fig. 214.
Stück eines Längsschnittes eines Schneidezahnes einer neugeborenen Katze. 300mal vergrößert. Technik Nr. 123, S. 359.
Die jungen Schmelzprismen haben sich am Schnitt aus den Fächern der Kittsubstanz herausgezogen und erscheinen als „Tomessche Fortsätze“ der inneren Schmelzzellen.
In gleicher Weise wie die Milchzähne entwickeln sich die bleibenden Zähne, indem in der 24. Fetalwoche an der Kante der weiter in die Tiefe wachsenden Zahnleiste neue Kolben entstehen, welche von der Seite her eindringende Papillen umwachsen. Die Anlagen der bleibenden Mahlzähne entstehen aus einer Verlängerung des hinteren Endes der Zahnleiste, die in der Tiefe der Schleimhaut nach rückwärts gegen den Unterkieferwinkel zu wächst. Die bleibenden Zähne liegen anfangs in der gleichen Alveole mit der Milchzahnanlage und werden erst später von einer eigenen Alveole umgeben. Beim Zahnwechsel wird die Scheidewand zwischen den beiden Alveolen wieder resorbiert, ebenso verfallen Zahnbein und Zement der Milchzahnwurzel der Resorption; diese wird in gleicher Weise wie bei derjenigen der Knochen durch Osteoklasten vermittelt, die zuerst aus Elementen des Zahnsäckchens, dann aus solchen der Wurzelhaut und zuletzt auch aus der Pulpa des Milchzahnes hervorgegangen sind. Das Schmelzorgan der Ersatzzähne geht nicht zu Beginn der Resorption der Milchzahnwurzel, sondern erst später zugrunde.
Feinere Zusammensetzung der Zahngewebe.
Das Zahnbein (Substantia eburnea, Dentin) ist eine weiße, undurchsichtige Masse, härter als Knochen. Es besteht aus einer Grundsubstanz, die „tangentiale“, d. i. von der Wurzel zur Krone verlaufende, sich dabei überkreuzende Bündel feiner, leimgebender Fibrillen enthält und von zahlreichen Kanälchen, den Zahnkanälchen, durchzogen wird (Fig. 215).
Die Fibrillen entsprechen den gleichen Bildungen in der Knochengrundsubstanz, mit denen sie in der Zusammensetzung und der funktionellen Bedeutung übereinstimmen.
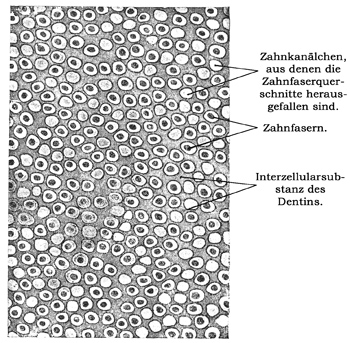
Fig. 215.
Zahnkanälchen und Zahnfasern im Querschnitt; aus einem Tangentialschnitt durch einen menschlichen Eckzahn. 750mal vergrößert. Technik Nr. 92, S. 359.
Die Zahnkanälchen beginnen mit einer Weite von 2-4 µ an der der Pulpahöhle zugewendeten Fläche des Zahnbeines (Fig. 222), und ziehen in schlank S-förmiger Krümmung immer mehr an Kaliber abnehmend, leicht geschlängelt in radiärer Richtung gegen die Zahnbeinoberfläche; dort enden sie entweder fein auslaufend an der Schmelzgrenze oder biegen schlingenförmig in Nachbarkanälchen um. Während ihres ganzen Verlaufes geben sie zahlreiche Seitenäste ab, welche Verbindungen mit Nachbarkanälchen herstellen. Die an die Pulpahöhle und an die Zahnkanälchen stoßende, innerste, jüngste Schicht der Grundsubstanz (Fig. 222) ist besonders widerstandsfähig gegen Kalilauge und läßt sich als ein zusammenhängendes Häutchen, festes Prädentin (S. 306) isolieren. Die die Zahnkanälchen begrenzenden Teile des Häutchens sind als (Neumannsche) „Zahnscheiden“ beschrieben worden. In den peripheren Gegenden des Zahnbeines liegen die Interglobularräume (Fig. 216, 217 und 218), sehr verschieden große, unverkalkt gebliebene Dentinpartien, gegen welche das verkalkte Dentin in Form meist halbkugliger Vorragungen, die „Zahnbeinkugeln“ heißen, vorspringt. Am Hals und an der Wurzel des Zahnes sind die Interglobularräume sehr zahlreich, sehr klein und bilden die dicht unter dem Zement liegende sogenannte Körnerschicht.
Fig. 216.
Schmelz. Aus einem radialen Längsschliff eines menschl. Backzahnes. 250mal vergrößert. Technik Nr. 122, S. 358.
Im Gegensatz zum Knochen besitzt das Zahnbein keine eigenen Blutgefäße; sein Stoffwechsel findet vermutlich auf dem Wege der Zahnbeinröhrchen statt, die ja auch die äußersten Schichten mit der gefäßreichen Pulpa in Verbindung setzen. In die Zahnbeinröhrchen dringen auch bei Karies nach lokaler Zerstörung des Schmelzes Bakterien ein, unter deren Einfluß bei dieser häufigen Erkrankung eine rasche Zersetzung des Zahnbeines stattfindet.
Auch die Empfindlichkeit des Zahnbeines, besonders der Schmelz-Dentingrenze, dürfte auf eine Schmerzleitung durch die Zahnbeinröhrchen zurückzuführen sein. Die Nervenenden der Pulpa reichen bis zu den Odontoblasten, deren Fortsätze ja die in den Röhrchen liegenden Zahnfasern sind. Im Zahnbein selbst sind bis jetzt Nerven nicht sicher nachgewiesen worden.
Sehr häufig finden sich in der Pulpa, besonders in Prämolaren und Molaren, sogenannte Dentikel, d. h. rundliche Zahnbeinmassen, die vermutlich aus irregulär liegenden Odontoblastennestern entstanden sind. Sie sollen manchmal zu Erkrankungen Veranlassung geben (Fig. 222).
Der Schmelz (Substantia adamantina, Email) ist noch härter als das Zahnbein; er besteht aus langen, 3-6 µ dicken, homogenen Fasern (Fig. 219), den Schmelzprismen (besser -fasern), welche entweder sechsseitig sind oder die Form halbrunder Rinnen oder Säulen mit einseitigen Kannelierungen (Fig. 220 oben) haben und durch eine spärliche, teils verkalkte, teils wasserreiche Kittsubstanz fest miteinander verbunden sind. Die Prismen bestehen durch und durch aus einer gleichmäßigen, doppelbrechenden Substanz und verlaufen unter mehrfachen Biegungen radiär von der Zahnbeinoberfläche bis zur freien Schmelzfläche; dabei ordnen sich die Prismen in Querlagen an; in jeder Lage liegen die Biegungen annähernd gleichsinnig, gegensinnig aber zu den Biegungen der Prismen in den anliegenden Schichten. An radiären Längsschliffen kommt durch schräg einfallendes Licht eine eigenartige Streifung zustande (Hunter-Schregersche Streifen), die in der verschiedenen Lichtbrechung an den abwechselnd verlaufenden Prismenlagen begründet ist. Die Schmelzoberfläche wird von einem sehr dünnen (ca. 1 µ), aber sehr widerstandsfähigen, strukturlosen Häutchen, der Cuticula dentis, bedeckt.
Fig. 217.
Aus einem Längsschliffe des Seitenteiles der Krone eines menschlichen Backzahnes. 240mal vergrößert. 1. Zahnkanälchen, teilweise bis in den Schmelz hineinlaufend, 2. Zahnbeinkugeln gegen 3. die Interglobularräume vorspringend. Technik Nr. 122, S. 358.
Fig. 218.
Aus einem Längsschliffe der Wurzel eines menschlichen Backzahnes. 240mal vergr. 1. Zahnkanälchen unterbrochen durch 2. eine körnige Schicht mit vielen kleinen Interglobularräumen, 3. Knochenhöhlen mit vielen Ausläufern. Technik Nr. 122, S. 358.
Beim Erwachsenen besteht der Schmelz zu ca. 98% aus anorganischen Substanzen; an entkalkten Zähnen ist er deswegen spurlos verschwunden. Beim Neugeborenen ist dagegen der Schmelz noch wesentlich reicher an organischen Substanzen.
Nach Behandlung mit Reagentien wird oft eine Querbänderung in den Schmelzprismen beobachtet.
Das Zement (Subst. ossea) stimmt in seinem Baue mit dem des Knochens überein; es enthält viele Sharpeysche Fasern. Haverssche Kanälchen kommen nur im Zement älterer Individuen vor; eine Schichtung in Lamellen ist selten ausgeprägt.
In der Nähe des Halses fehlen die Knochenhöhlen; die Fibrillenbündel (S. 114) der Grundsubstanz stehen dort ausnahmsweise senkrecht zur Oberfläche.
Fig. 219.
Vom Neugeborenen. 240mal vergrößert. Technik Nr. 125, S. 359.
Fig. 220.
Aus einem Querschliff des Zahnschmelzes eines erwachsenen Menschen. 600mal vergr. Technik Nr. 125, S. 359.
Fig. 221.
Sechs Odontoblasten in Zahnfasern f auslaufend; p Pulpafortsätze. 240mal vergrößert. Aus der Pulpa eines neugeborenen Knaben. Technik Nr. 124, S. 359.
Fig. 222.
Pulpa mit Odontoblasten und „Dentikeln“ aus einem menschl. Eckzahn. 250mal vergrößert. Technik wie Nr. 92, S. 226.
Die Zahnpulpa wird durch ein weiches, von elastischen Fasern freies Bindegewebe hergestellt, dessen Grundsubstanz einen aus kollagenen Einzelfibrillen bestehenden Faserfilz besitzt; die zahlreichen teils rundlichen, teils sternförmigen Zellen bilden ein plasmodiales Gefüge, das an der Oberfläche der Pulpa zu einer einheitlichen Schicht länglicher Zellen, „Odontoblasten“, angeordnet ist; dieselben schicken außer kleinen Fortsätzen, Pulpafortsätzen (Fig. 221p), die mit anderen Elementen der Pulpa in Verbindung stehen, lange Ausläufer, die Zahnfasern, in die Zahnkanälchen hinein (Fig. 221f).
Die Arterien treten durch das Pulpaloch mit den Nerven ein und bilden ein hauptsächlich an der Oberfläche liegendes Kapillarnetz; die Nerven endigen in mehreren feinen marklosen Netzen dicht an den Odontoblasten (s. a. oben S. 310). Lymphgefäße sind ebenfalls in der Pulpa vorhanden.
Die Wurzelhaut (Alveolarperiost) ist die derbe, an elastischen Fasern arme Bindegewebshaut, welche den Raum zwischen Zahnwurzel und Alveole ausfüllt. Sie ist reich an Nerven und wird durchsetzt von Sharpeyschen Fasern, die aus dem Knochen der Alveole in das Zement eindringen und so beide verbinden. Ihr oberster Teil heißt Ligamentum circulare dentis.
In dem blutgefäßreichen Bindegewebe finden sich neben weißen Blutzellen nicht selten kleine Gruppen von Epithelzellen, die als Überreste der Epithelscheide (s. S. 305) gedeutet und für die gelegentliche Entstehung von epithelial ausgekleideten Wurzelhautzysten verantwortlich gemacht werden.
Das Zahnfleisch (Gingiva) ist der den Alveolarrändern, zunächst dem Zahnhals gelegene Teil der Mundschleimhaut, der dort nicht, wie sonst auf den Proc. alveolares, vom Periost dieser deutlich getrennt ist, sondern mit den derben Bindegewebsbündeln des Lig. circul. dentis sich eng verbindet. Die Zahnfleischpapillen sind relativ hoch (7 mm) und reich an Blutgefäßen; die Lymphgefäße bilden feinmaschige, zarte Netze.
Drüsen fehlen dem Zahnfleisch. Nächst dem Zahnhalse ist das Bindegewebe nicht selten mit Lymphozyten infiltriert.
4. Die Zunge.
Die Zunge wird in ihrer Hauptmasse von quergestreiften Muskeln gebildet, die, in Bündel und Fasern aufgelöst, sich vielfach durchflechten und am größten Teil ihres Umfanges von einer Fortsetzung der Mundschleimhaut überzogen werden. Die Verlaufsrichtung der Muskeln ist teils eine senkrecht aufsteigende (Mm. geniogloss., lingual. und hyogloss.), teils eine transversale (M. transversus linguae), teils eine longitudinale (M. lingual. und styloglossus). Indem die Muskelbündel sich (meist rechtwinklig) durchkreuzen, entsteht ein zierliches, auf Durchschnitten sichtbares Flechtwerk. Eine mediale Scheidewand, das Septum linguae, trennt die Muskelmassen der Zunge in eine rechte und eine linke Hälfte. Das Septum beginnt niedrig am Zungenbeinkörper, erreicht seine größte Höhe in der Mitte der Zunge und verliert sich nach vorn, allmählich wieder niedriger werdend; es durchsetzt nicht die ganze Höhe der Zunge, sondern hört ca. 3 mm vom Zungenrücken entfernt auf. Das Septum besteht aus derben Bindegewebsfasern.
Die Schleimhaut der Zunge besteht, wie diejenige der Mundhöhle, aus Epithel und Tunica propria und wird durch eine Submucosa mit der Unterlage verbunden. Die Schleimhaut ist durch ansehnliche Entwicklung und komplizierte Gestaltung von Papillen ausgezeichnet. Man unterscheidet drei Hauptformen von Papillen: 1. P. filiformes (conicae), 2. P. fungiformes (clavatae), 3. P. vallatae (circumvallatae). Unter diesen sind die P. filiformes mit ihren verhornten Teilen vorzugsweise mechanisch wirksam; sie werden auch als P. operariae bezeichnet. Die P. fungiformes und vallatae dagegen haben ein zarteres Epithel und dienen durch besondere Einrichtungen der Geschmacksfunktion; man faßt sie deshalb als P. gustatoriae zusammen. Die P. fungiformes besitzen beim Erwachsenen allerdings nur gelegentlich sogenannte Geschmacksknospen (s. Geschmacksorgan); beim Neugeborenen, wo diese Papillenform auch zahlreicher vorhanden ist, gehören Geschmacksknospen hier zu den regelmäßigen Einrichtungen.
Die Papillae filiformes (Fig. 223) sind zylindrische oder konische Erhebungen der Tunica propria, deren oberes Ende 5-28 kleine sekundäre Papillen trägt. Sie bestehen aus deutlich faserigem Bindegewebe, sowie aus zahlreichen elastischen Fasern und werden von einer mächtigen Lage geschichteten Plattenepithels überzogen, das nicht selten über den sekundären Papillen eine Anzahl fadenförmiger, verhornter Fortsätze bildet. Dabei nehmen die einzelnen Epithelzellen die Form spitzer aufeinander getürmter Hüte an. Die P. filiformes sind in großer Menge über die ganze Zungenoberfläche verbreitet; ihre Länge schwankt zwischen 0,7-3,0 mm. Die Papillae fungiformes (Fig. 223) sind kuglige, mit etwas eingeschnürtem Stiele der Tunica propria aufsitzende Gebilde, deren ganze Oberfläche mit sekundären Papillen besetzt ist. Sie bestehen aus einem deutlichen Flechtwerke von Bindegewebsbündeln, die nur wenige elastische Fasern enthalten. Das sie überziehende Epithel ist etwas dünner und an der Oberfläche nicht verhornt. Die P. fungiformes sind, nicht so zahlreich wie die P. filiformes, über die ganze Zungenoberfläche verbreitet und am Lebenden wegen ihrer roten Farbe, die von den durch das dünne Epithel durchschimmernden Blutgefäßen herrührt, meist leicht sichtbar. Ihre Höhe schwankt zwischen 0,5-1,5 mm. Die oft sehr unregelmäßig ausgebildeten Papillae vallatae (Fig. 224) gleichen breiten, plattgedrückten P. fungiformes und sind durch eine verschieden tiefe, kreisförmige Furche von der übrigen Schleimhaut abgesetzt; den jenseits der Furche liegenden Schleimhautteil bezeichnet man als Wall. Die Papille besteht aus demselben Bindegewebe wie die P. fungiformes, enthält aber beim Menschen nicht selten längs oder schräg verlaufende glatte Muskelfasern, die übrigens auch im Wall, hier zirkulär angeordnet, gefunden werden. Die Papillae vallatae besitzen nur auf der oberen, nicht an der seitlichen Fläche, sekundäre Papillen. Im Epithel der Seitenflächen der Papillae vallatae und zuweilen auch des Walles liegen die Endapparate der Geschmacksnerven, die Geschmacksknospen (s. Geschmacksorgan); im Wall finden sich zuweilen Solitärknötchen (S. 189). Die P. vallatae kommen in beschränkter Zahl (8-15) nur am hinteren Ende des Zungenrückens vor. Ihre Höhe beträgt 1-1,5 mm bei 1 bis 3 mm Breite.
Papilla foliata wird eine jederseits am hinteren Seitenrande der Zunge gelegene Gruppe von querparallelen Schleimhautfalten genannt, die durch mehr oder weniger tiefe Gräben voneinander getrennt und durch ihren Reichtum an Geschmacksknospen ausgezeichnet sind. Die P. foliata ist besonders beim Kaninchen entwickelt, beim Menschen aber verschiedentlich (von vorn anfangend) zurückgebildet, wobei die serösen Drüsen schwinden und dafür Fett und nicht selten adenoides Gewebe auftritt. Am lateralen Rande der Zungenwurzel finden sich die Papillae lenticulares, den Pap. fungiformes ähnelnde, aber mehr abgeplattete Gebilde, deren Tunica propria viele weiße Blutzellen enthält.
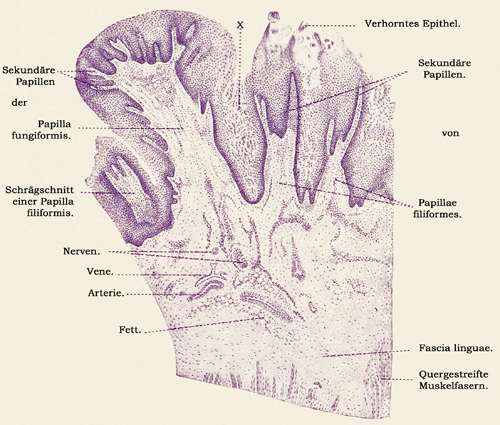
Fig. 223.
Längsschnitt der Zungenschleimhaut des Menschen. 25mal vergrößert. × Mazeriertes Epithel (Leichenerscheinung). Technik Nr. 126, S. 359.
Die Submukosa ist an der Spitze und an dem Rücken der Zunge fest und derb („Fascia linguae“) und innig mit den unterliegenden Teilen verbunden.
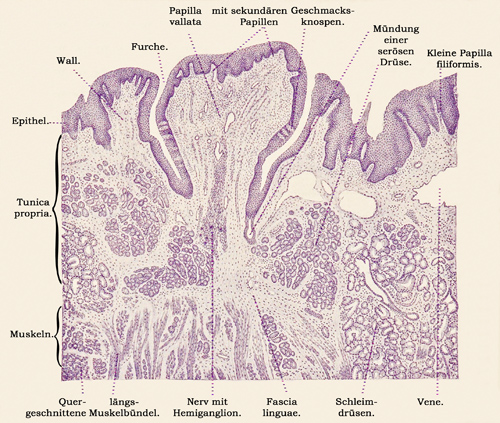
Fig. 224.
Senkrechter Schnitt durch eine Papilla vallata des Menschen. 25mal vergr. Technik Nr. 126, S. 359.
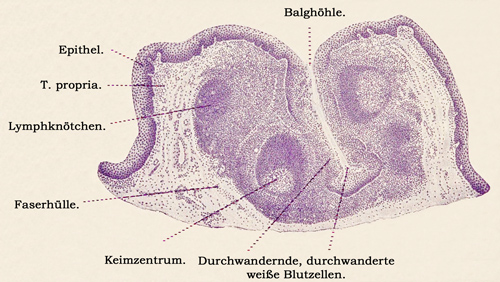
Fig. 225.
Senkrechter Schnitt durch die Mitte eines Zungenbalges des erwachsenen Menschen. 25mal vergr. Technik Nr. 126, S. 359.
Zungenbälge (Folliculi linguales). Eine besondere Beschaffenheit gewinnt die Schleimhaut der Zungenwurzel von den P. vallatae an bis zum Kehldeckel durch die Entwicklung der Zungenbälge. Das sind kuglige, 1-4 mm große Anhäufungen adenoiden Gewebes, die, in der obersten Schichte der T. propria gelegen, makroskopisch leicht wahrnehmbare Erhabenheiten bilden. In der Mitte derselben sieht man eine punktförmige Öffnung, den Eingang in die enge, tiefe Balghöhle, welche von einer Fortsetzung des geschichteten Epithels der Mundschleimhaut ausgekleidet wird. Rings um dieses Epithel liegt lymphathisches Gewebe, welches eine verschieden große Anzahl von Knötchen mit Keimzentren (S. 185) enthält und scharf gegen das fibrilläre Bindegewebe der Tunica propria abgegrenzt ist; dieses ordnet sich bei gut ausgeprägten Bälgen in kreisförmigen Faserzügen um das adenoide Gewebe und bildet so die Faserhülle (Fig. 225).
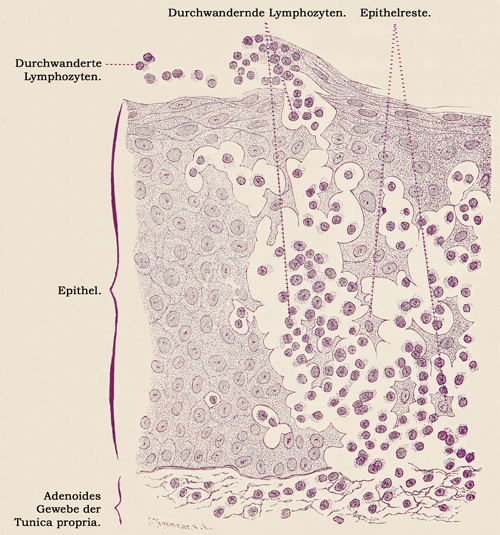
Fig. 226.
Aus einem feinen Schnitt durch einen Zungenbalg des erwachsenen Menschen. 420mal vergrößert. Links ist das Epithel frei von Lymphozyten, rechts wandern viele Lymphozyten durch. Dadurch wird das Epithel gesprengt, man sieht größere und kleinere Reste von Epithel zwischen den breiten, durch die Lymphozyten gebahnten Straßen. Technik Nr. 126, S. 359.
Unter normalen Verhältnissen wandern fortwährend zahlreiche weiße Blutzellen des adenoiden Gewebes durch das Epithel in die Balghöhle und gelangen von da in die Mundhöhle, in deren Sekret sie als „Schleim- und Speichelkörperchen“ leicht gefunden werden. Das Epithel wird dabei oft vorübergehend in großer Ausdehnung zerrissen (Fig. 226) oder ist derart mit Lymphozyten infiltriert, daß seine Grenze gegen die Tunica propria nicht mehr mit Sicherheit nachgewiesen werden kann.
Drüsen. Drei Arten offener Drüsen (S. 85) sind in der Zungenschleimhaut und in den oberflächlichen Schichten der Zungenmuskulatur gelegen. Die serösen Drüsen finden sich nur in der Gegend der Papillae vallatae und foliatae (s. S. 314), die Schleimdrüsen in der Zungenwurzel, entlang der Zungenränder und in einem Felde vor der medianen Pap. vallata, die gemischte Glandula lingualis anterior (Nuhn) in der Zungenspitze, an deren Unterfläche sie mit mehreren Ausführungsgängen mündet. (Bezüglich des feineren Baues dieser Drüsen vergleiche Kap. Drüsen der Mundhöhle.)
Die Blutgefäße der Zungenschleimhaut bilden der Fläche nach ausgebreitete Netze, von welchen Zweige in sämtliche Papillen bis in die sekundären Papillen hinein sich erstrecken. An der Zungenwurzel durchbohren kleine Arterien die Faserhülle der Zungenbälge und lösen sich in Kapillaren auf, welche bis ins Innere der Knötchen hineinreichen. Die Blutgefäße der Drüsen bilden ein die Endstücke umspinnendes Kapillarnetz.
Die Lymphgefäße der Zunge sind in zwei Netzen angeordnet: ein tieferes, aus gröberen Gefäßen bestehendes, und ein oberflächliches Netzwerk, welch letzteres Lymphgefäße der Papillen aufnimmt. Sehr reichlich sind die Lymphgefäße der Zungenwurzel entwickelt, welche an den Zungenbälgen ein die Knötchen umspinnendes Netz bilden.