II. Abschnitt. Mikroskopische Anatomie und spezielle Technik. (continued 2)
Reading edition
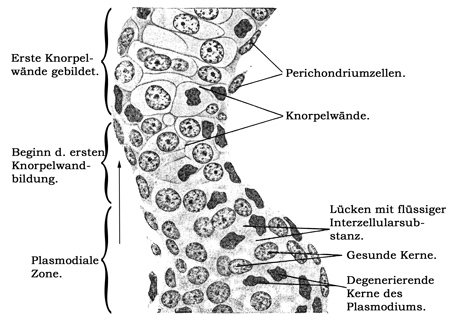
Fig. 57.
Schnitt durch einen Kopfknorpel einer jungen Unkenlarve (Bombinator). 500mal vergr. Technik Nr. 32, S. 119. In der Richtung des Pfeiles schreitet die Bildung der Knorpelsubstanz fort. Während dieses Vorganges gehen zahlreiche Kerne des Plasmodiums zugrunde (s. degenerierende Kerne). Die vielen degenerierenden Zellkerne findet man teils in schon durch Interzellularsubstanz abgeschlossenen Knorpelzellen, teils im Plasmodium vor Bildung der ersten Scheidewände. Von manchen Autoren wird angenommen, daß diese Kerne mit zugehörigen Zytoplasmateilen sich unmittelbar in Interzellularsubstanz umwandeln.
Auch auf die Verwandtschaft zum sogenannten Chordagewebe muß an dieser Stelle verwiesen werden.
Hier sind die Zellen durch gegenseitigen Druck abgeplattete, mit einer widerstandsfähigen Membran versehene Gebilde, zwischen denen Interzellularsubstanz nicht nachweislich entwickelt ist. Die Zellen sind im Innern von einer oft glykogenreichen Flüssigkeit erfüllt, das Zytoplasma beschränkt sich auf einen, den Kern enthaltenden schmalen Wandbelag. Große Mengen von solchen Zellen sind durch eine bindegewebige Hülle zu einem drehrunden Stab (Chorda dorsalis) zusammengefaßt (Fig. 58).
Typisches Knorpelgewebe entsteht erst durch Vermehrung der Interzellularsubstanz, deren weitere Ausbildung die Zellen vollständig voneinander entfernt. Trotzdem bleiben die Zellen, wie wir annehmen, für das Leben und für das Wachstum des Knorpels die maßgebenden Faktoren. Auch vollständig von Interzellularsubstanz umschlossene Knorpelzellen teilen sich und bilden dann zwischen sich neue Interzellularsubstanz aus, wodurch sie zum Wachstum des Knorpels beitragen; durch ständige Neubildung von Interzellularsubstanz an der Zelloberfläche vergrößert sich der Abstand zwischen je zwei Zellen immer mehr (sogenanntes interstitielles Wachstum). An der Oberfläche des Knorpels nehmen, sofern der Knorpel an Bindegewebe angrenzt, immer neue Teile des plasmodialen Zellnetzes an der Knorpelbildung teil (sogenanntes appositionelles Wachstum).
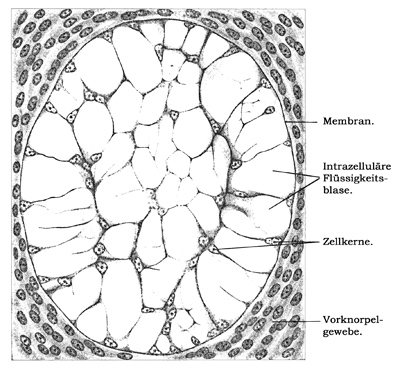
Fig. 58.
Chorda dorsalis; aus einem Querschnitt durch einen älteren Hühnerembryo. Rings um die Chorda das Vorknorpelgewebe des Wirbelkörpers. 500mal vergr. Technik Nr. 33, S. 119.
Die Form der Knorpelzellen wird durch ihre Umschließung durch die relativ starre Interzellularsubstanz bedingt; die Zellen liegen in den sogenannten Knorpelhöhlen; rundliche oder einseitig abgeplattete Formen sind die häufigsten (Fig. 59).
Der kuglige Kern zeigt einen lockeren Aufbau; im Zytoplasma sind teils fädige, teils körnige Plastosomen, ferner die verschiedensten, paraplasmatischen Granula, Glykogen, Fett, ja an manchen Stellen selbst Pigment aufgefunden worden. Im ganzen besitzen die Knorpelzellen einen trägen Stoffwechsel, zeigen aber in ihrem ganzen Verhalten die Verwandtschaft mit den fixen Bindegewebszellen (Fibroblasten) deutlich.
Im Gegensatz zu vielen weicheren Stützgeweben lassen sich wandernde Zellen im Knorpel nicht nachweisen, was mit dem Fehlen umfänglicher Spalten in der Interzellularsubstanz zusammenhängt. So kommt es auch, daß die Knorpelzellen zu ihrem Stoffwechsel auf einen langsamen Diffusionsstrom angewiesen sind, der um so größeren Widerständen zu begegnen scheint, je weiter in die Tiefe des Knorpelgewebes er vordringt.
Die vermeintlichen Kanälchen in der Interzellularsubstanz sind Schrumpfungsbilder, welche durch Behandlung des Knorpels mit absolutem Alkohol oder mit Äther hervorgerufen werden können.
Aus obigem erklärt es sich wohl, daß nur in den Oberflächenschichten des Knorpels gelöste Substanzen (saure Farbstoffe) intrazellulär abgelagert werden, sofern sie nicht allzu leicht diffusionsfähig sind. Auf die gleiche Ursache muß es bezogen werden, wenn in dickeren Knorpelmassen gerade in den am weitesten im Innern gelegenen Teilen Zellen zugrunde gehen und die Interzellularsubstanz Zersetzungserscheinungen erkennen läßt.
Auch die Tatsache, daß es nur sehr schwer gelingt, die Knorpelzellen gut zu fixieren, hängt mit der schlechten Durchdringbarkeit der Interzellularsubstanz zusammen. Sehr oft schrumpfen die Zellen, so daß der Zellkörper nur noch durch fädige Fortsätze mit der Wand der Knorpelhöhle verbunden ist.
Beim Knorpel ist es vorzugsweise die Interzellularsubstanz, die uns mehrere Formen unterscheiden läßt: a) hyalinen Knorpel, b) elastischen Knorpel, c) Bindegewebsknorpel (Faserknorpel). Jedes Knorpelgewebe besitzt eine gewisse Festigkeit, ist jedoch elastisch und leicht schneidbar. Dabei läßt sich der hyaline Knorpel am meisten auf Druck beanspruchen, ist aber nicht so biegsam; der elastische Knorpel ist dagegen äußerst biegsam und imstande, beim Nachlassen der Biegung seine ursprüngliche Form wieder einzunehmen. Der Bindegewebsknorpel verbindet mit großer Druckfestigkeit eine starke Widerstandskraft gegen Zug.
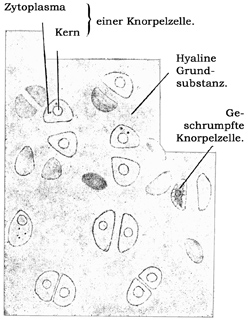
Fig. 59.
Flächenbild eines Stückes des Proc. ensiformis des Frosches; frisch. 300mal vergr. Technik Nr. 34, S. 119. Die dunkel gezeichneten Zellen liegen nicht in der Einstellungsebene und schimmern deshalb nur undeutlich hervor.
a) Der hyaline Knorpel ist von leicht bläulicher, milchglasartiger Farbe. Er findet sich in den Knorpeln des Respirationsapparates, der Nase, der Rippen, der Gelenke, ferner in den Synchondrosen und beim Embryo an vielen Stellen, die späterhin durch Knochen ersetzt werden. Er ist charakterisiert durch seine gleichartige Grundsubstanz, welche bei den gewöhnlichen Untersuchungsmethoden ungeformt, durchaus homogen erscheint, aber bei gewissen Manipulationen (z. B. bei künstlicher Verdauung) in Faserbündel zerfällt. Auch das Verhalten bei polarisiertem Lichte spricht für eine fibrilläre Struktur der Grundsubstanz des hyalinen Knorpels. Sie ist sehr fest, sehr elastisch und gibt beim Kochen Knorpelleim (Chondrin).
Der Knorpel besitzt eine ausgesprochen fibrilläre Grundstruktur, die jedoch beim hyalinen Knorpel erst nach einer komplizierten Behandlung zum Vorschein kommt. Man glaubt, daß es die Chondroitinschwefelsäure sei, die die Fibrillen in einem Quellungszustande hält, der sie für gewöhnlich unsichtbar macht; diese Annahme würde mit der Tatsache übereinstimmen (s. S. 96), daß auch die kollagenen Fibrillen des Bindegewebes durch Säurequellung unsichtbar werden.
Bei den meisten Knorpeln lassen sich verschiedene Zonen von Interzellularsubstanz unterscheiden, die jede Knorpelzelle konzentrisch umgeben. Man unterscheidet als innerste, meist sehr feine Lage die Knorpelkapsel, an die sich nach außen der Zellhof anschließt. Zwischen diesen, den Zellen eng angeschlossenen Teilen der Interzellularsubstanz liegt die interterritoriale Substanz. In tieferen Lagen vieler Knorpel werden mehrere Knorpelzellen samt den sie umgebenden Höfen von Interzellularsubstanz zu Gruppen (Territorien) zusammengefaßt (Fig. 60).
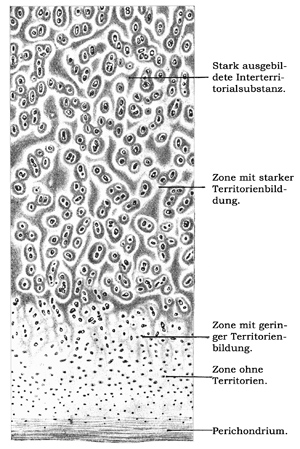
Fig. 60.
Rippenknorpel vom Menschen im Längsschnitt. 50mal vergr. Technik Nr. 35, S. 119.
Die Interzellularsubstanz des hyalinen Knorpels färbt sich besonders leicht mit basischen Farbstoffen, besonders in den tieferen, vom Perichondrium entfernteren Lagen; nahe dem Perichondrium findet sich ein allmählicher Übergang zu dem Verhalten des kollagenen Bindegewebes, das sich leichter mit sauren Farbstoffen färben läßt.
Durch sehr eingehende, mikrochemische Analysen hat man versucht, die verschiedene Färbbarkeit, Widerstandsfähigkeit gegen chemische Agenzien, das wechselnde Verhalten der einzelnen Schichten gegen polarisiertes Licht zu einer Lokalisation bestimmter, chemischer Substanzen zu verwerten. Doch ist es ebensogut möglich, daß nur ein verschiedenes physikalisches Verhalten die genannten Unterschiede veranlaßt. Im ganzen scheint die Festigkeit von der Zelle aus nach der interterritorialen Substanz hin zuzunehmen.
Bei fast allen Knorpeln, die von Bindegewebe (Perichondrium) umgeben sind, zeigt die Oberflächenschicht einen ganz allmählichen Übergang von Bindegewebe in Knorpel, was sich in der Form und Anordnung der Zellen, in dem Hervortreten von Bindegewebsfibrillen in der Interzellularsubstanz und in der Färbbarkeit geltend macht. Nach innen zu besitzen die Zellen eine mehr rundliche Gestalt; im Innern dickerer, auf Druck und Zug besonders stark beanspruchter Knorpel (Rippenknorpel [Fig. 60], Gelenkknorpel, Trachea) finden wir eine ausgesprochene territoriale Gliederung der Interzellularsubstanz, weshalb manche Autoren diese Gliederung als Ausdruck einer besonders festen Gestaltung ansehen.
Die inneren Teile dickerer Knorpel, die vom Ernährungsstrom am weitesten abliegen, zeigen nicht nur relativ früh geschädigte Zellen: auch die Interzellularsubstanz verändert sich hier zuerst. So wird sie an Rippen- und Kehlkopfknorpeln stellenweise in starre Fasern umgewandelt, die dem Knorpel einen schon makroskopisch sichtbaren, asbestähnlichen Glanz verleihen (Fig. 61). Ferner finden sich im höheren Alter (in den Kehlkopfknorpeln schon in den zwanziger Jahren) in der hyalinen Grundsubstanz Einlagerungen von Kalksalzen, die anfangs in Form kleiner Körnchen, dann als vollständige, um die Knorpelzellen gelegene Schalen auftreten.
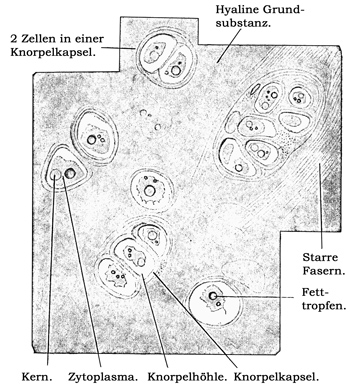
Fig. 61.
Stück eines Schnittes durch einen menschlichen Rippenknorpel mehrere Tage nach dem Tode untersucht. Das Zytoplasma hat sich von der Wand der Knorpelhöhle zurückgezogen. 300mal vergr. Technik Nr. 35, S. 119.
Die bessere Ernährung der perichondrialen Schichten bedingt es, daß nach Verletzung älterer Knorpel von dieser Zone allein eine Neubildung von Knorpelgewebe stattfinden kann. Bei jüngeren Individuen soll eine Regeneration auch durch Teilung fertiger Knorpelzellen zustande kommen.
b) Der elastische Knorpel ist von leicht gelblicher Farbe. Er kommt nur am Ohre, am Kehldeckel, an der Cartilago cuneiformis und corniculata, an der Spitze und am Proc. vocal. der Gießbeckenknorpel vor. Er zeigt dasselbe Gefüge wie der hyaline Knorpel, nur ist seine Grundsubstanz von verschieden dichten Netzen bald feinerer, bald gröberer, elastischer Fasern durchsetzt (Fig. 62), die sich mit spezifischen Elastinfärbungen (s. Nr. 6, S. 35) färben lassen und auch sonst alle Eigenschaften der elastischen Fasern besitzen.
Die elastischen Fasern entstehen hier wahrscheinlich nicht direkt aus den Zellen, sondern durch Umwandlung der Grundsubstanz; sie treten in der Umgebung der Knorpelzellen als Körnchen auf, die späterhin in Längsreihen verschmelzend zu Fasern werden, eine Erscheinung, die indes von anderer Seite als Zeichen des (postmortalen) Zerfalls der elastischen Fasern angesehen wird.
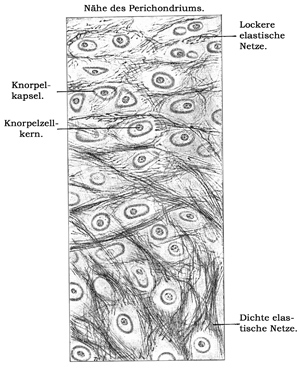
Fig. 62.
Elastischer Knorpel vom äußeren Gehörgang des Menschen. 250mal vergr. Technik Nr. 36, S. 119.
c) Der Bindegewebsknorpel kommt in den Ligg. intervertebralia, in der Symphysis oss. pub., an den Rippenknorpelgelenken, am Capitulum ulnae und an den Gelenkenden des Kiefer- und des Sternoklavikulargelenkes vor. Die Grundsubstanz des Bindegewebsknorpels enthält reichlich fibrilläres Bindegewebe (Fig. 63), dessen lockere Bündel nach den verschiedensten Richtungen verlaufen. Die nur spärlichen, mit dicken Kapseln (S. 109) versehenen Knorpelzellen liegen zu kleinen Gruppen oder Zügen vereint in großen Abständen.
3. Das Knochengewebe.
Das Knochengewebe zeigt ebenfalls nach Zusammensetzung und Entstehung engste Beziehungen zu kollagene Substanzen enthaltenden, weichen Stützgeweben; doch ist diese Form der festen Stützsubstanz in einer ganz anderen Richtung differenziert als das Knorpelgewebe.
Deshalb kommt auch eine direkte Umbildung fertigen Binde- oder Knorpelgewebes in Knochengewebe nicht vor. Die hier als „Metaplasie“ bezeichneten Vorgänge sind vielmehr so zu verstehen, daß indifferente Bildungszellen des Bindegewebes sich unter verschiedenen Einflüssen bald zu Knochenzellen, bald zu Knorpelzellen oder zu typischen Sehnenzellen umwandeln können (siehe auch Kap. Knochenentwicklung).
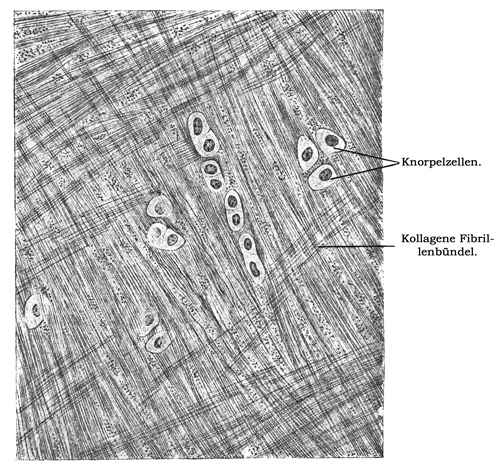
Fig. 63.
Bindegewebsknorpel. Aus einem Schnitt durch den Discus articularis des Sternoklavikulargelenkes. Technik Nr. 37, S. 119. 350mal vergr.
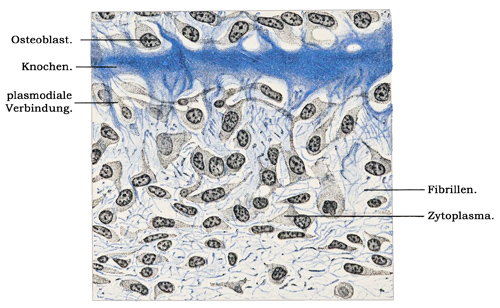
Fig. 64.
Entstehung des Knochengewebes (Oberkieferanlage eines etwa 9 Wochen alten menschlichen Embryos). Scharfe Färbung der Bindegewebsfibrillen nach Technik Nr. 20, S. 116. 500mal vergr.
Die erste Bildung von Knochensubstanz geht von dem gleichen plasmodialen Stadium aus wie die Bildung aller Stützgewebe. Dabei zeichnen sich die mit der Knochenbildung betrauten Teile des embryonalen Plasmodiums (sogenannte Osteoblasten) durch ihren Zytoplasmareichtum und die Kerngröße aus. In ihrer Umgebung differenziert sich zunächst die Interzellularsubstanz zu einem Teil in Fibrillenbündel aus (über deren Entstehung die gleichen Erwägungen gelten wie für die Fibrillen der weichen Stützgewebe, s. S. 96). Die Knochenbildung (Fig. 64) ist nun dadurch erst deutlich von der Entstehung einfachen Bindegewebes unterschieden, daß die Fibrillen frühzeitig fest zusammengebacken werden; dies geschieht durch Umwandlung der interfibrillären Interzellularsubstanz, die sicher ebenfalls unter dem Einfluß der Osteoblasten erfolgt. Durch diese Umwandlung, deren Endphase durch Einlagerung von Kalksalzen bestimmt wird, kommt die charakteristische Härte und das Aussehen der Knocheninterzellularsubstanz zustande.
Zum Unterschied vom Knorpel grenzen sich die Zellen nicht gleich vollständig voneinander ab, sondern bleiben durch feine Ausläufer auch dann miteinander in Verbindung, wenn sie allseitig von Interzellularsubstanz umschlossen sind, d. h. zu Knochenzellen (Osteozyten) geworden sind (Fig. 65, wo nur die Kanälchen, aber nicht die verbindenden Zytoplasmastränge zu sehen sind).
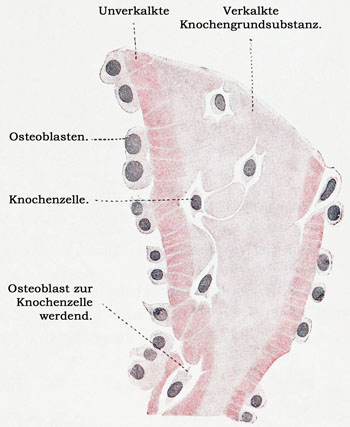
Fig. 65.
Stück eines Querschnittes der Humerusdiaphyse eines 4monatl. menschl. Fötus. 675mal vergr. Technik Nr. 90.
In späteren Stadien der Knochenbildung und im fertigen Knochengewebe ist es nicht sicher, ob die Zellen den primären Zusammenhang wahren. Die Möglichkeit dazu besteht, da die Knochenhöhlen, in denen die Zellen liegen, durch zahlreiche Kanälchen unter sich zusammenhängen.
Eine Modifikation des Knochengewebes, das Zahnbeingewebe, unterscheidet sich in genetischer Beziehung dadurch vom Knochengewebe, daß seine Bildungszellen, die Odontoblasten, nicht von der Interzellularsubstanz ganz umschlossen werden, sondern nur Fortsätze in diese senden (s. Genaueres unter „Zähne“).
Die Interzellularsubstanz des Knochengewebes ist durch ihre Härte, Festigkeit und Elastizität ausgezeichnet, Eigenschaften, welche sie einer innigen Vermengung organischer und anorganischer Teile verdankt.
Die Verbindung beider Teile ist derart, daß man jeden derselben entfernen kann, ohne die Struktur des Gewebes zu zerstören. Durch Behandlung mit Säuren (siehe „Entkalken“, S. 18) werden die Kalksalze ausgezogen, das Gewebe wird dadurch biegsam, schneidbar wie Knorpel; man nennt deshalb entkalkten Knochen „Knochenknorpel“. Umgekehrt lassen sich durch vorsichtiges Glühen die organischen Teile entfernen; so behandelter Knochen heißt „kalzinierter Knochen“. Die fossilen Knochen sind (durch die lange Einwirkung von Feuchtigkeit) gleichfalls der organischen Teile beraubt.
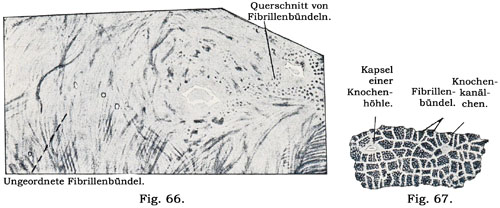
Fig. 66. Fig. 67.
Aus Stücken senkrecht durch das Schädeldach eines erwachsenen Menschen gelegter Schnitte. 550mal vergr. Nach Technik 11, S. 39.
Die Knochengrundsubstanz erscheint gewöhnlich homogen oder feinstreifig und besteht 1. aus leimgebenden, unverkalkten Fibrillen, die entweder ungeordnet oder zu gröberen oder feineren Bündeln vereint sind, und 2. aus einer dazwischen befindlichen geringen Menge von Kittsubstanz, welche die Kalksalze (vorzugsweise basisch phosphorsauren Kalk) einschließt.
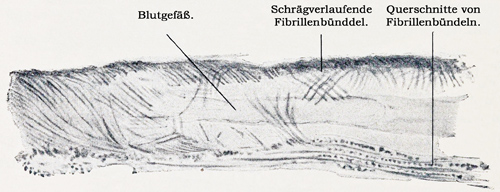
Fig. 68.
Stück eines Längsschnittes der Fingerphalanx eines erwachsenen Menschen. 550mal vergr. Nach Technik 11, S. 39.
Die gröberen Fibrillenbündel bilden Geflechte: solche „grobfaserige“ (= geflechtartige) Knochensubstanz ist beim Erwachsenen nur an den Nähten und an den Ansatzstellen der Sehnen vorhanden; findet sich aber zur Zeit der Entwicklung in den perichondralen und sekundären Knochen (siehe Kap. Entwicklung der Knochen). Die feineren Bündel können sich unter spitzwinkliger Durchflechtung zu dünnen, 3 µ dicken Platten, „Lamellen“ vereinen. Aus solcher „feinfaseriger“ (= lamellöser) Knochengrundsubstanz besteht fast das ganze Skelett des Erwachsenen.
Die Knochengrundsubstanz enthält zahlreiche, kürbiskernähnliche, 15-27 µ lange Hohlräume, die Knochenhöhlen (früher „Knochenkörperchen“) Fig. 69, welche durch viele verästelte, feine Ausläufer, die Knochenkanälchen, untereinander kommunizieren. Auf diese Weise wird ein die ganze Interzellularsubstanz durchziehendes, feines Kanalsystem hergestellt.
Die von den Flächen der Knochenhöhlen ausgehenden Knochenkanälchen entspringen nahezu unter rechten Winkeln und sind wenig verästelt, die von den Kanten ausgehenden Kanälchen entspringen unter verschiedenen Winkeln und sind reichlicher verästelt (Fig. 69).
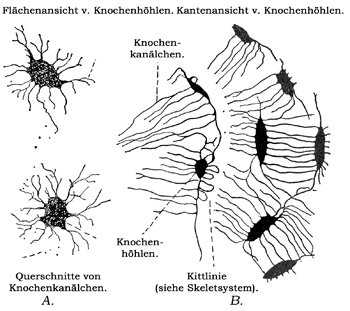
Fig. 69.
Stücke von Schliffen trockner Knochen, A der Tibia, B des Femur eines erwachsenen Menschen. 550mal vergr. Technik Nr. 91.
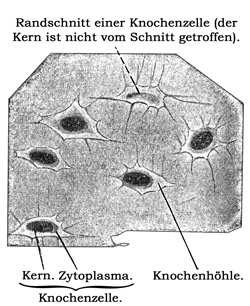
Fig. 70.
Stück eines Schnittes durch die knöcherne Nasenmuschel eines erwachsenen Menschen. 550mal vergrößert. Technik Nr. 92.
Die Wand der Knochenhöhlen und -kanälchen, die „Knochenkapsel“ ist frei von Fibrillen (Fig. 67) und besonders fest. In den Knochenhöhlen liegen die kernhaltigen Knochenzellen (Fig. 70), welche eine plattovale Gestalt haben und dünne Fortsätze in die Knochenkanälchen senden.
Die Ernährung des Knochengewebes ist anscheinend in vollkommenerer Weise gewährleistet als diejenige des Knorpelgewebes; in feineren Substanzlagen genügt das feine Kanälchensystem, das die Knochenhöhlen untereinander und mit der Oberfläche verbindet. In dickeren Knochensubstanzmassen kommen allenthalben größere Kanäle zur Ausbildung, in denen Blutgefäße verlaufen.
Die gute Durchsaftung des Knochengewebes erklärt es zum Teil, daß dieses Gewebe trotz seiner Härte zu den bildungsfähigsten Strukturelementen des Körpers zu rechnen ist. Es paßt sich veränderten Beanspruchungen durch einen entsprechenden Neu- bzw. Umbau an. Diese Fähigkeit ist die Grundlage zur Heilung von Knochenverletzungen (Weiteres s. unter Skelettsystem).
Technik.
Nr. 14. Embryonales Stützgewebe. Man fertige von jungen, nach Altmann (s. Techn. Nr. 3, S. 72) fixierten und in Paraffin eingebetteten Wirbeltierembryonen dünne (5-7,5 µ) Schnitte an, klebe sie auf Objektträger (S. 29) und färbe mit Eisenhämatoxylin (s. S. 40).
Nr. 15. Um starke vitale Speicherung von Trypanblau in Bindegewebszellen zu erzielen, verfahre man nach S. 48, injiziere mindestens 6-8 ccm der Farbstofflösung in Dosen zu 1 ccm in Abständen von 4-5 Tagen (bei einer weißen Maus). Die besten Bilder von Bindegewebszellen ergeben Flachschnitte durch Haut und Unterhautzellgewebe.
Nr. 16. Plasmazellen finden sich in mit Sublimat oder Zenkerscher Flüssigkeit (S. 16) fixierten Präparaten von Schleimdrüsen, Magenschleimhaut und anderwärts; gute Kernfärbungen (Hämatoxylin z. B.) lassen den Radkern gut erkennen. Man achte auf die den Kern umgebende oder ihm anliegende helle Zytoplasmaregion.
Nr. 17. Mastzellen. Man fixiere 1-3 qcm große Stückchen
Schleimhaut (z. B. des Mundes, des Rachens oder des Darmes) in absolutem Alkohol (S. 14) 3-8 Tage.
Die Schnitte kommen a) in ca. 100 ccm Alaunkarmin-Dahlia 24 Stunden,
dann b) in mehrmals zu wechselnden Alkohol abs. 24 "
dann Einschließen in Xylolbalsam nach § 10,3 (S. 45).
Wasser ist gänzlich zu vermeiden, da die mit Dahlia gefärbten Körnchen auch an gut fixierten Präparaten in Wasser löslich sind.
Nr. 18. Azidophile Zellen. Man betrachte das Bindegewebe in Schnitten mit beliebigen Fixierungsmitteln behandelter Organe, nachdem sie mit Hansenschem Hämatoxylin und Eosin gefärbt sind; besonders zahlreich sind diese Zellen in den Schleimhäuten anzutreffen.
Nr. 19. Gefensterte Membranen erhält man, indem man Stückchen von ca. 5 mm Seite des Endokards abpräpariert, in einem Tropfen Wasser auf den Objektträger bringt und 1-2 Tropfen Kalilauge unter das Deckglas fließen läßt (S. 47). Man betrachte die Ränder des Präparates (Fig. 44).
Auch die Art. basilaris gibt gute gefensterte Membranen; man schneide ein Stück der Arterie der Länge nach mit der Schere auf und lege es in 10 ccm reine Kalilauge 6 Stunden lang; dann bringe man ein ca. 1 cm langes Stück in einigen Tropfen Wasser auf den Objektträger und suche es durch Schaben mit einem Skalpell in Lamellen zu zerlegen, was leicht gelingt. Deckglas, starke Vergrößerung! Die kleinen Löcher der Membran sehen wie glänzende Kerne aus.
Bei schwachen Vergrößerungen erkennt man die Membran an ihrer dunklen Konturierung.
Will man konservieren, so kommt die Membran vom Objektträger
a) in Brunnenwasser 5 Minuten,
dann b) in destill. Wasser 5 "
dann c) in 3 ccm 1/30%iges Kongorot (S. 9) 12-20 Stunden,
dann Einschluß in Xylolbalsam nach § 10,3 (S. 45).
Nr. 20. Gallertiges Bindegewebe. Man färbt Paraffinschnitte von einem in Zenkerscher Flüssigkeit fixierten (S. 16) Nabelstrang (von 3monatigen Embryonen bis zur Geburt) entweder in Hansenschem Hämatoxylin und Eosin (S. 41) oder, um eine bessere Differenz zwischen dem Zytoplasma und den kollagenen Fibrillenbündeln zu bekommen nach folgendem Verfahren:
1. Hansens Hämatoxylin 5 Minuten (etwas überfärben),
2. Abspülen in Aq. dest.,
3. gründlich wässern in Brunnenwasser,
4. Eosin w. g. 1%ig mit Zusatz von 10 Tropfen Eisessig auf 100 ccm 20 Min.,
5. Abspülen in Aq. dest.,
6. 2%ige Phosphormolybdänsäure 10 Sekunden,
7. Abspülen in Aq. dest.,
8. Methylblau (Hollborn) 1%ig 1-2 Minuten,
9. Abspülen in Aq. dest.,
10. Alkohol 96%ig, worin das überschüssige Eosin und Methylblau ausgezogen werden,
11. Alkohol absol.,
12. Xylol,
13. Balsam.
Bei dieser Färbung, die im Prinzipe der von Mallory, Heidenhain u. a. (s. Lehrbücher der Mikrotechnik) angegebenen folgt, wandelt die Phosphormolybdänsäure in den Strukturen, in die sich das hochmolekulare Methylblau, das man auch durch andere blaue kolloidale Farbstoffe (Wasserblau, Isaminblau u. a.) ersetzen kann, einlagert, das Eosin zu einem in Alkohol leicht löslichen Körper um, so daß es dann im Alkohol 96%ig aus diesen Strukturen ausgezogen wird. Es kommt darauf an, die Phosphormolybdänsäure nicht zu lange einwirken zu lassen; ebenso muß die Wirkung des Methylblau nicht zu lange dauern. Man richte sich nach den oben angegebenen Zeiten, die in dem soeben ausgeführten Sinne variiert werden können.
Nr. 21. Retikuläres Gewebe. Lymphknoten werden beliebig fixiert, dann dicke Schnitte (mit dem Rasiermesser, nach der Gefriermethode oder nach Einbettung in Paraffin) angefertigt; die Schnitte schüttelt man, nach Überführung in Wasser, in einem Reagenzglas gründlich, wodurch aus den Maschen des retikulären Gewebes die Lymphozyten entfernt werden. Dann werden die Schnitte nach einer der Methoden in Nr. 20 gefärbt; bei Anwendung der Eosin-Methylblaufärbung gelingt es, auch die Retikulinfasern darzustellen.
Nr. 22. Lockeres Bindegewebe. a) frisch: Intermuskuläres Bindegewebe, z. B. das dünne zwischen M. serratus und den mm. intercost. liegende Blatt wird in kleinen, 1-2 cm langen Streifen abpräpariert, ein kleines Stückchen davon auf dem trockenen Objektträger mit Nadeln rasch ausgebreitet; dabei klebt das Stückchen auf dem Objektträger an und kann leicht zu einem ganz dünnen Häutchen ausgezogen werden:
Bündel; das Häutchen wird rasch mit einem Tropfen Kochsalzlösung und einem Deckglas bedeckt. Man sieht die wellig verlaufenden blassen Bindegewebsbündel, bei einiger Übung kann man auch die schärfer konturierten, glänzenden elastischen Fasern schon jetzt unterscheiden, an günstigen Stellen auch die Kerne der Bindegewebszellen.
Bei einem derartigen Präparate setze man verdünnte Essigsäure vom Deckglasrande her zu, worauf die kollagenen Bündel quellen und unsichtbar werden, während die Zellkerne und die elastischen Fasern deutlich hervortreten.
Einem anderen frischen Präparate setze man in der gleichen Weise einen Tropfen Neutralrotlösung (1 : 1000) zu, worauf sich die Granula der Mastzellen, später auch andere Bindegewebszellen granulär färben.
b) Dauerpräparate kann man vom intermuskulären Bindegewebe eines größeren Säugetieres oder des Menschen in folgender Weise herstellen: man quetscht ein größeres Stück von einer Seite in der Weise zusammen, daß sich an der entgegengesetzten Seite durch die eingeschlossenen Luftblasen dünne Lamellen beulenartig vorwölben; dann ersetzt man den Fingerdruck durch einen Faden, mit dem man den so gewonnenen Stiel des Präparates abbindet. Das ganze fixiert man nun in Formolalkohol (s. S. 15). Nach 24-48 Stunden schneidet man dünne, gespannte Bindegewebslamellen ab und färbt sie zunächst in Hansens Hämatoxylin, dann in Weigerts Resorzinfuchsin (s. S. 35), endlich in Pikro-Fuchsin nach van Gieson (s. S. 42) (Fig. 47).
Man kann an solchen Präparaten natürlich auch beliebige, andere Färbungen vornehmen.
Nr. 23. Netz der Bindegewebsbündel. In absol. Alkohol fixierte und mit Hansens Hämatoxylin (S. 32) (Fig. 48) gefärbte Stückchen des Omentum werden in Xylolbalsam nach § 10,3 (S. 45) konserviert.
Nr. 24. Verfilztes Bindegewebe. Haut von der menschlichen Handfläche oder Fußsohle wird in Alkohol absol. (S. 14) fixiert, in Paraffin eingebettet, die 5-7,5 µ dicken Schnitte nach den unter Nr. 20 angegebenen Methoden gefärbt.
Nr. 25. Sehnenzellen. Feine Längsschnitte (Freihand) einer fixierten und gehärteten menschlichen Sehne werden 1/2 Stunde in Hansens Hämatoxylin gelegt, dann direkt aus der Farbe auf einen Objektträger gebracht. Nun bringe man ein paar große Tropfen Eisessig auf den Schnitt, der dadurch ganz rot wird, und lege ein Deckglas auf (bei dickeren Schnitten unter etwas Druck). Schon bei schwachen Vergrößerungen sieht man die langen Kerne der Sehnenbündel. Sobald die Kerne sichtbar sind, wird der Schnitt in eine Schale mit ca. 30 ccm Aqua destillata gebracht, woselbst die blaue Farbe des Schnittes wiederkehrt. Dann Konservieren in Xylolbalsam nach § 10,3 (S. 45). Häufig sieht man nur die Kerne, an günstigen Stellen auch das Zytoplasma der Sehnenzellen (Fig. 51).
Nr. 26. Sehnenquerschnitt. Den Schwanz einer jungen Ratte fixiert man, nachdem die Haut abgezogen ist, in Müller-Formol (Nr. 7, S. 16), entkalkt nach § 6, 2, bettet in Zelloidin ein. Die ca. 10 µ dicken Schnitte werden mit Hansens Hämatoxylin (S. 32) und Eosin gefärbt.
Nr. 27. Stärkere elastische Fasern erhält man durch Zerfasern eines ca. 5 mm langen, stecknadeldicken Stückchens des frischen Nackenbandes eines Rindes in einem Tropfen Kochsalzlösung (Fig. 52). Man kann das Präparat mit Pikrokarmin färben (S. 47) und in verdünntem Glyzerin konservieren.
Nr. 28. Querschnitte starker, elastischer Fasern erhält man vom Nackenband des Rindes, von dem man kleine Stückchen in Formolalkohol (s. S. 15) fixiert, in Paraffin einbettet und 10 µ dick schneidet. Färbung nach den in Nr. 20 gegebenen Vorschriften.
Nr. 29. Pigmentgewebe findet man an Durchschnitten menschlicher oder tierischer Augen.
Nr. 30. Fettzellen. Man nehme aus der Achselhöhle eines recht abgemagerten Individuums ein linsengroßes Stückchen des rötlichgelben, gelatinösen Fettes und behandle es nach Technik Nr. 22. Dünne Stellen zeigen Fettzellen, wie in Fig. 56; man kann unter dem Deckglase mit Pikrokarmin (S. 47) färben und in verdünntem Glyzerin konservieren. Gewöhnliche Fettzellen, von beliebigen Stellen des Körpers genommen, untersuche man gleichfalls in Kochsalzlösung. Man betrachte die kugligen Zellen bei wechselnder Einstellung (vgl. Fig. 43).
Zu einem solchen Präparate setze man unter dem Deckglase einen Tropfen einer Lösung von Sudan III (man löst Sudan III in heißem 70%igen Alkohol, läßt absetzen und filtriert vor dem Gebrauche); in kurzer Zeit färben sich alle Fettzellen und etwa aus diesen ausgetretene Fettropfen orangerot.
Will man Fett konservieren, so fixiert man in Formalin (s. S. 14), fertigt Gefrierschnitte, die in Hansens Hämatoxylin (S. 32) gefärbt werden; dann kommen die Schnitte auf 10 Minuten in Alk. 50%, auf 20-30 Minuten in filtrierte Sudanlösung (s. o.); abspülen in Alk. 50%, Aq. dest.; einschließen in Glyzerin.
Nr. 31. Fettgewebe sieht man an Durchschnitten vieler, beliebig fixierter Präparate, vor allem der Haut (vgl. dort). Durch die Alkoholbehandlung wird das Fett ausgezogen, die Maschen der leeren Hülsen bieten dann ein dem Anfänger oft schwerverständliches Bild (Fig. 55).
Nr. 32. Knorpelentwicklung. Ca. 10 mm lange Kaulquappen vom Frosch fixiert man in Zenkerscher Lösung (S. 16), bettet nach Nr. 2, S. 71 in Nelkenöl-Kollodium-Paraffin oder in Paraffin ein und schneidet quer zur Längsausdehnung vom Kopfe an; überall finden sich hier Knorpelspangen, die bei geeigneter Kern- und Zytoplasmafärbung (Hansens Hämatoxylin und Eosin, S. 41), Boraxkarmin und Methylblau) das in Fig. 57 dargestellte Bild zeigen.
Nr. 33. Querschnitte durch jüngere Embryonen aller Wirbeltiere (in Zenkerscher Flüssigkeit [S. 16] fixiert, in Paraffin eingebettet, mit Hansens Hämatoxylin [S. 32] und Eosin gefärbt) sind gute Objekte zum Studium der Chorda dorsalis.
Nr. 34. Hyaliner Knorpel. Man schneide den sehr dünnen Schwertfortsatz des Frosches mit einer Schere aus, bringe ihn auf einen trockenen Objektträger, bedecke ihn mit einem Deckglase und untersuche rasch mit starker Vergrößerung. Die Knorpelzelle füllt die Knorpelhöhle vollkommen aus (Fig. 59). Bei längerer Beobachtung lasse man einen Tropfen Kochsalzlösung zufließen.
Nr. 35. Hyaliner Rippenknorpel. Fixierung: Alkohol absol. oder Zenkersche Flüssigkeit (S. 16); Einbettung: Zelloidin oder Paraffin; Färbung: Hansens Hämatoxylin (S. 32) und Eosin.
Frischer Rippenknorpel älterer Individuen, den man ohne Vorbereitung mit dem Rasiermesser schneidet und in Wasser betrachtet, zeigt die starren „Asbestfasern“.
Nr. 36. Elastischer Knorpel. Man nehme einen Gießbeckenknorpel des Menschen (noch besser des Rindes); die gelbliche Farbe des Proc. vocalis, noch deutlicher der oberen Spitze, verrät den elastischen Knorpel. Man schneide so, daß die Grenze zwischen elastischem und hyalinem Knorpel in den Schnitt fällt und betrachte die Schnitte in Wasser.
Schnitte dieses und anderer in Alkohol absol. fixierter elastischer Knorpel färbe man nach S. 35 C und konserviere in Xylolbalsam (§ 10,3, S. 45).
Nr. 37. Bindegewebsknorpel. Ligg. intervertebralia, einen Discus articularis schneide man in Stücke von 1-2 cm Seite, fixiere sie in 100 ccm Kalibichromatessigsäure (S. 15) und bette in Paraffin oder Zelloidin ein (auch Rasiermesserschnitte sind nach Härtung in Alkohol (nach § 5, S. 17) brauchbar). Die nach Nr. 20 gefärbten Schnitte konserviere man in Xylolbalsam. Schnitte durch Randpartien ergeben auch hyalinen Knorpel; Schnitte durch zentrale Teile der Bandscheibe zeigen große Gruppen von Knorpelzellen.
III. Muskelgewebe.
Die Muskelgewebe hängen dem Ursprung nach enge mit den Stützgeweben zusammen. Für die übergroße Mehrzahl aller Muskeln ist nachgewiesen, daß sie aus derselben plasmodialen Anlage stammen wie die Stützgewebe.
Nur die Binnenmuskeln des Auges und die den Schweißdrüsenepithelien enge anliegenden Muskeln sondern sich erst später von den Epithellagen, denen sie unmittelbar zugeteilt bleiben.
Die Berechtigung, die hierher gehörigen Elemente zu einem besonderen Gewebe zusammenzufassen, liegt einmal in ihrer ganz andersartigen Fortentwicklung, und dann in ihrer Funktion.
Der Differenzierungsvorgang, der zur Bildung von Muskelelementen führt, besteht vorwiegend in der Ausbildung neuer intraplasmatischer Strukturen, die in der Form von Fibrillen auftreten, wobei es wiederum zweifelhaft ist, ob wir diese dem Protoplasma oder dem Metaplasma (s. S. 57) zurechnen sollen. Tatsächlich scheint mit ihrer Ausbildung die Funktion der Muskelelemente in engstem Zusammenhange zu stehen.
Die Funktion aller Muskelelemente besteht in ihrer ausgesprochenen Formveränderlichkeit. Diese ist gegenüber der allen Zellen mehr oder weniger zukommenden Formveränderlichkeit erheblich gesteigert; vor allem aber ist sie einseitig gerichtet.
Besonders bei den Amöben, dann aber auch bei vielen sogenannten Wanderzellen (s. Blut) sehen wir die Formveränderlichkeit als sogenannte amöboide Bewegung dadurch charakterisiert, daß an der ganzen Oberfläche der Zellen Fortsätze (sogenannte Pseudopodien) ausgestreckt werden können, denen dann der übrige Zellkörper nachfolgen kann (s. Fig. 101). Diese Formveränderlichkeit führt zur Fortbewegung und kann sich nach allen Richtungen auswirken.
Demgegenüber ist das Muskelelement durch seine Einordnung in das Stützgewebe nur mehr zu Formveränderungen in einer Richtung befähigt, die dann zur Verlängerung oder zur Verkürzung des Elementes führen können. Daraus erklärt es sich wohl auch, daß alle Muskelelemente eine langgestreckte Form besitzen, wobei die Längsachse mit der Verkürzungsrichtung zusammenfällt.
Die Wirkung eines Muskelelementes ist also ohne die Verbindung mit dem umliegenden Stützgewebe undenkbar; der Zusammenhang mit diesem ergibt sich zudem aus der gemeinsamen Anlage.
1. Das Gewebe der glatten Muskeln.
Im einfachsten Falle ist jedes Muskelelement nur mit einem einzigen Kerne ausgestattet und besitzt somit den Wert einer Zelle (Fig. 71). In diesen sogenannten glatten Muskelzellen ist auch die Differenzierung des Zytoplasmas noch wenig weit vorgeschritten; äußerst feine, mit den gewöhnlichen Methoden gar nicht nachweisbare Fibrillen liegen im Zytoplasma, das im übrigen den indifferenten Charakter im wesentlichen beibehalten hat.
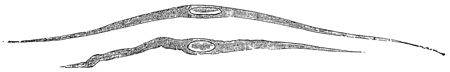
Fig. 71.
Zwei glatte Muskelfasern aus dem Dünndarm eines Frosches. 240mal vergr. Durch 35%ige Kalilauge isoliert. Die Kerne haben durch die Kalilauge ihre charakteristische Form eingebüßt. Technik Nr. 38, S. 130.
Ihre Länge schwankt beim Menschen zwischen 45 und 225 µ, ihre Breite zwischen 4 und 7 µ; im schwangeren Uterus hat man noch längere, bis 1/2 mm messende, glatte Muskelfasern gefunden.
Die Gestalt der Zellkerne schwankt mit der Länge; in der Regel verlängert sich der Kern mit der Faser. Anscheinend paßt sich auch die Form des Kernes den verschiedenen Kontraktionszuständen an. So findet man nicht selten geschlängelte, spiralig gewundene Kerne; auch das Chromatingerüst ist in Form quer (spiralig?) gestellter Stränge angeordnet (Fig. 72).
Der Einfluß des Kortraktionszustandes auf die Form der ganzen Muskelfasern kommt gut zum Ausdruck, wenn man sie an prallgefüllten und kontrahierten Hohlorganen, z. B. am Magen untersucht. Am leeren Magen sind die Muskelfasern spindelförmig im Querschnitt rundlich, der Kern ist längsoval; war die Magenwand bei der Untersuchung stark gedehnt, so sind Zelle und Kern bis um das Dreifache länger, dünner, der Zellquerschnitt abgeplattet.
Das Diplosom der Muskelzellen liegt an der Längsseite des nicht genau axial gelagerten Kernes.
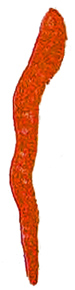
Fig. 72
Kern einer glatten Muskelfaser. 600mal vergrößert. Aus einem Querschnitt einer mit Sublimatkochsalz (S. 16) fixierten menschl. Extremitätenarterie.
Die Muskelfasern liegen bald zerstreut im Bindegewebe, bald sind sie zu Komplexen innig vereint. Auch im letzteren Falle sind sie stets allseitig von Bindegewebe umgeben, das aber um so feinere Lagen bildet, je dichter die Muskelzellen zusammengelagert sind.
Durch besondere Methoden lassen sich feine Verbindungsfäden zwischen den Muskelzellen darstellen, die von den einen als Interzellularbrücken, von andern als Kunstprodukte gedeutet werden. Im ersteren Falle würde man zu der Ansicht kommen, daß auch das glatte Muskelgewebe den ursprünglichen, plasmodialen Verband bewahrt hat; betrachtet man dagegen die Interzellularbrücken als Kunstprodukte, so haben sich die glatten Muskelzellen vom ursprünglichen Bildungsplasmodium losgelöst und sind rings von Interzellularsubstanz umschlossen.
Die Interzellularsubstanz des Bindegewebes bildet um die Muskelzellen feinste Fibrillen enthaltende Hüllen (Fig. 73). Die Ausbildung der Fasern ist sehr verschieden stark.
Während sie z. B. in der Muskulatur der Darmwand sehr zart sind, so daß ihr Nachweis nur mit besonderen Methoden möglich ist, sind sie zwischen den Muskelfasern des Ureters und noch mehr zwischen denen des Eileiters so gut ausgebildet, daß die Muskeln bei spezifischen Bindegewebsfärbungen ganz verdeckt werden.
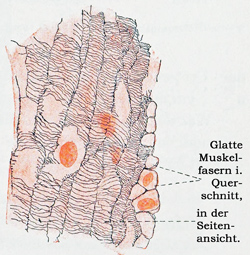
Fig. 73.
Stück eines senkrechten Schnittes durch die Muskelhaut eines menschlichen Magens. Feine Bindegewebsfasern bilden eine Hülle um die Muskelfasern; sie ist an einzelnen Stellen angeschnitten, so daß man die nackte Muskelfaser sieht. 600mal vergr. Technik Nr. 39, S. 130.
Dickere bindegewebige Scheidewände finden sich nur in größeren Abständen; elastische Fasern sind in wechselnder Menge sowohl in den dicken Scheidewänden wie in den feinen Faserbündeln vorhanden.
Die glatten Muskelfasern sind entweder zu parallelfaserigen Häuten (Darmmuskeln) oder zu komplizierten Flechtwerken (Harnblase, Uterus) vereinigt.
In ihrer Tätigkeit sind die glatten Muskelzellen von der Versorgung mit Nerven (s. bei Nervenendigungen) und Blutgefäßen abhängig. Die größeren Blutgefäße verlaufen in den stärkeren bindegewebigen Scheidewänden; die Kapillaren dagegen dringen zwischen die Fasern selbst ein und bilden dort langgestreckte Netze. Auch Lymphgefäße sind in ansehnlicher Menge vorhanden.
Die glatten Muskelzellen führen nur langsame, aber dauerhafte Zusammenziehungen aus, die in der Regel dem Willen nicht unterworfen sind; dies hängt mit ihrer Versorgung durch Nerven des vegetativen Systems (s. Nervensystem) zusammen. Dementsprechend finden sich glatte Muskeln im Darmkanale, in den zuführenden Luftwegen, in der Gallenblase, im Nierenbecken, in den Ureteren, in der Harnblase, in den Geschlechtsorganen, in Blut- und Lymphgefäßen, im Auge und in der äußeren Haut.
Während bei den glatten Muskelzellen verzweigte Formen und echte, plasmodiale Verbindungen die Ausnahme bilden, ist beides in ausgeprägtem Maße bei dem
2. Herzmuskelgewebe
ausgebildet.
Dies zeigt sich schon bei der Entstehung des Herzmuskelgewebes, indem hier die ursprüngliche, plasmodiale Anlage dauernd beibehalten wird; es kommt hier also nicht zur vollständigen Abgrenzung von einzelnen Zellindividuen wie bei der glatten Muskulatur.
Bei niederen Wirbeltieren (z. B. beim Frosch) lassen sich allerdings durch Isolation noch spindelförmige, mit gestrecktem Kerne versehene Gebilde aus der Herzmuskulatur isolieren, die man als Zellen ansprechen kann; doch sind sie auch hier zumeist mit seitlichen, zytoplasmatischen Abzweigungen versehen, die eine Verbindung zu Nachbarfasern herstellen.
Bei Säugetieren erhält man durch Isolation immer nur Bruchstücke des plasmodialen Gefüges (Fig. 74).
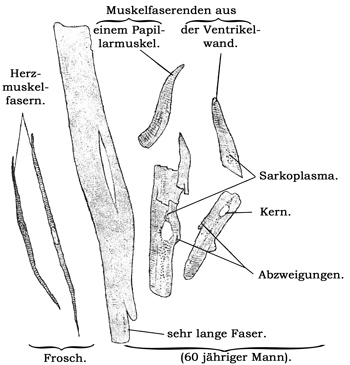
Fig. 74.
Isolierte Herzmuskelfasern. 230mal vergr. Technik wie Nr. 38, S. 130.
Zum Unterschiede von den glatten Muskelzellen fällt die größere Faserbreite auf, die sowohl in Längs- wie in Querschnitten zum Ausdruck kommt (Fig. 75). Gleichwohl entspricht die ganze Faserbreite (zum Unterschiede vom quergestreiften Skelettmuskel) nur einem Kernbereich; der Zellkern nimmt wie bei der glatten Muskelzelle die Achse der Faser ein.
Nur an wenigen Stellen endigt das plasmodiale Gefüge der Herzmuskulatur durch Verbindung mit anderen Geweben; so besonders in den Papillarmuskeln, beim Übergang in die sehnigen Chordae tendineae. An diesen Stellen lassen sich auch zugespitzte Enden von Herzmuskelfasern (s. Fig. 74) häufiger isolieren, während solche in der Ventrikelwand (Fig. 74) seltener zu Gesichte kommen.
Die Verbindung mit dem umgebenden Stützgewebe ist ähnlich bewerkstelligt, wie in dichten Lagen glatter Muskulatur; alle Fasern werden von dünnen Häutchen von Interzellularsubstanz umgeben; nur sind entsprechend der reichlicheren Versorgung der Herzmuskulatur mit Kapillaren die Zwischenräume zwischen den einzelnen Fasern größer.
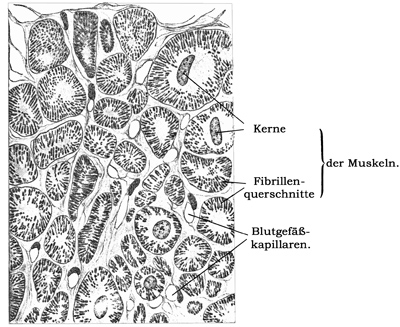
Fig. 75.
Querschnitt durch Herzmuskelgewebe. Aus einem Schnitt durch die Vorhofswand an der Einmündung der Vena cava sup. (Mensch). 500mal vergr. Technik Nr. 40, S. 130.
Die feinere Struktur des Herzmuskelplasmodiums läßt sich als Produkt der Inanspruchnahme dieses Gewebes deuten. Die Fähigkeit, sich dauernd rhythmisch zu kontrahieren, schreiben wir dem Zytoplasmareichtum zu.
Den nicht zu Differenzierungsprodukten umgewandelten Teil des Muskelzytoplasmas nennt man Sarkoplasma, kleine Körnchen unbekannter Bedeutung in ihm Sarkosomen.
Die Fähigkeit, relativ rasche, ausgiebige Kontraktionen auszuführen, hängt offenbar mit der schärferen Sonderung und der spezifischen Ausgestaltung der Fibrillen zusammen.
Größere Höfe von Sarkoplasma, häufig mit pigmentierten und farblosen Körnchen, Glykogen und anderen paraplastischen Substanzen versehen, finden sich (besonders gut an Längsschnitten sichtbar) in unmittelbarer Umgebung der locker gebauten Zellkerne.
Durch die Zusammenfassung der Fibrillen zu Bündeln, erhalten Querschnitte von Herzmuskelfasern ein charakteristisches Aussehen. Das Sarkoplasma ist vorzugsweise in der Faserachse gelegen, von welcher Fortsetzungen desselben zwischen die Fibrillenblätter oder -bündel ausstrahlen.
Die Fibrillen verleihen der Herzmuskelfaser in viel stärkerem Maße als der glatten Muskelzelle eine deutliche Längsstreifung, die sich nicht auf irgendwelche Zellterritorien beschränkt, sondern durch eine größere Reihe von Kernbereichen derselben Faser hindurch verfolgt werden kann; durch die seitlichen Verbindungsbrücken ziehen Fibrillenzüge von einer Faser in die benachbarten hinüber, in denen sie dann weiter verfolgt werden können (Fig. 76).
Das Phänomen der Querstreifung, das in erster Linie den Fibrillen innewohnt, soll bei der Skelettmuskulatur genauer berücksichtigt werden. Wenn es beim Herzmuskelgewebe nicht immer einwandsfrei beobachtet wird, so liegt das vorzugsweise an der angewandten Technik.
Nicht zu verwechseln mit der Querstreifung sind die sogenannten Querlinien (Glanzstreifen, Kittlinien, Wachstumszonen, Schaltstücke), die sehr oft beobachtet werden (Fig. 76) und in ihrer Bedeutung noch stark umstritten sind. Sie grenzen einzelne Zellgebiete ab; die kontinuierliche Anordnung der Fibrillen stempelt die Herzmuskulatur gleichwohl zum Blasmodium. Die Querlinien werden von manchen als Wachstumszonen betrachtet; von andern wird ihnen ein Einfluß auf den Kontraktionsablauf zugeschrieben.
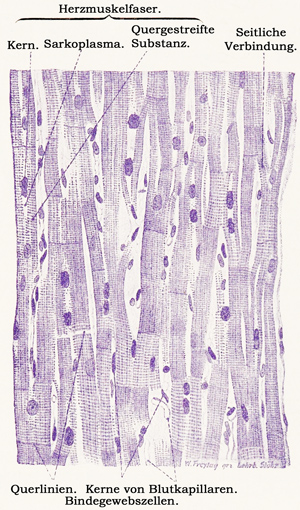
Fig. 76.
Stück eines Längsschnittes eines Papillarmuskels des menschlichen Herzens. 240mal vergr. Technik Nr. 40, S. 130. Man beachte, wie häufig die Abstände der Querstreifen gerade an den Querlinien wechseln, was gegen die Deutung dieser als Kunstprodukte spricht (vgl. S. 124). Die Querlinien selbst erscheinen bald schmal dunkel, bald breit hell.
3. Das Gewebe der quergestreiften Muskeln.
Mit dieser Form erreicht das Muskelgewebe die höchste bekannte Spezialisierung. Bei der Entwicklung wird das Material für dieses Gewebe sehr frühzeitig zu besonderen Primitivgebilden, den Myotomen, abgesondert.
Dies sind, allen Wirbeltieren zukommende, segmentale zu beiden Seiten in der Rückenregion angeordnete Substanzhaufen, in denen sehr frühzeitig eine scharfe Begrenzung einzelner Zellen erkennbar wird. Diese scharfe Begrenzung der Formeinheiten behält das Skelettmuskelgewebe zeitlebens bei.
Durch komplizierte Umlagerungen legen sich die einzelnen „Myoblasten“ bald parallel in die Längsachse des Embryos, wobei lange Zeit die segmentale Begrenzung durch sogenannte Myosepten beibehalten wird (Fig. 77).
Die meisten Myoblasten durchbrechen später unter erheblicher Verlängerung die Segmentgrenzen, womit sie auch vielfach den Zusammenhang mit ihrem Ursprungsort verlieren. Mit der Längen- (und Dicken)zunahme vermehren sich innerhalb der Myoblasten auch die Zellkerne, zumeist anfangs in der Weise, daß die Kerne in der Faserachse liegen bleiben und in verschiedenen Abschnitten der Faserlänge aufeinanderfolgen. Die Vermehrung soll amitotisch vor sich gehen (Fig. 77). Später ist die Muskelfaser so reich an Kernen, daß man deren auf jedem Querschnitte mehrere antrifft.
Das mit gleichzeitiger Kernvermehrung vor sich gehende Wachstum (auf die inneren Differenzierungsvorgänge soll unten hingewiesen werden) führt dazu, daß aus jedem Myoblasten eine Muskelfaser entsteht, die eine von der Umgebung wohlabgrenzbare Formeinheit darstellt, aber sich von einer einfachen Zelle durch den großen Reichtum an Kernen auszeichnet.
Embryonale Muskelfasern haben die Fähigkeit, sich durch Längsspaltung zu vermehren.
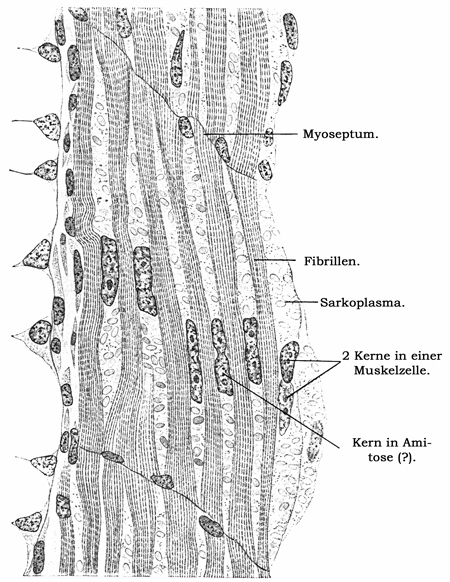
Fig. 77.
Myotome. Aus einem Horizontalschnitt durch eine junge Kaulquappe vom Frosch. 500mal vergr. Technik Nr. 41, S. 130.
Die Skelettmuskelfasern des erwachsenen Organismus sind entsprechend diesem Entwicklungsgange zu höchst komplizierten Gebilden geworden. Sie haben die Form langer zylindrischer Fäden, deren Enden im Innern größerer Muskeln zugespitzt oder abgestumpft sind; an den Enden der Muskeln besitzen die Fasern ein inneres spitzes und ein äußeres, an die Sehne anstoßendes breiteres Ende; letzteres ist entweder abgerundet oder läuft in einige stumpfe, oft treppenförmig abgestumpfte Spitzen aus.
Auch Anastomosen, Spaltbildungen und Teilungen der Muskelfasern kommen vor; in einzelnen Fällen (Augenmuskeln, Muskeln der Zunge, der äußeren Haut) sind die Fasern verästelt (Fig. 78).
Ihre Länge schwankt zwischen 5,3 und 12,3 cm, ihre Dicke zwischen 10 und 100 µ.
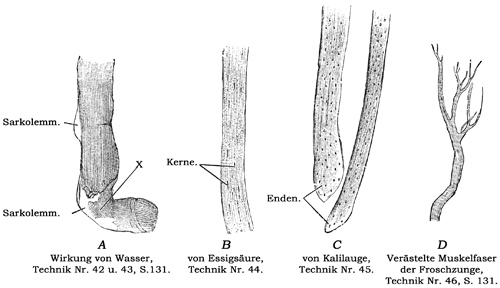
Fig. 78.
Stücke isolierter quergestreifter Muskelfasern des Frosches, 50mal vergr. Bei × ist die Muskelsubstanz zerrissen, ihre Querstreifung ist nicht, die Längsstreifung dagegen deutlich zu sehen. Die zahlreichen Kerne in C erscheinen bläschenförmig gequollen, die Querstreifung der Muskelsubstanz ist in B und C bei dieser Vergrößerung nicht sichtbar.
Es ist wahrscheinlich, daß es noch längere Fasern gibt, doch ist deren vollkommene Isolierung mit großen Schwierigkeiten verknüpft.
Im embryonalen Zustande bestehen keine oder nur geringe Dickenunterschiede der Muskelfasern: nach der Geburt erfolgt ein ungleiches Dickenwachstum, dessen Intensität abhängig ist: 1. von der Funktion des Muskels — beim Erwachsenen besitzen starke Muskeln dicke, zarte Muskeln dünne Fasern; 2. vom Ernährungszustand des Individuums — es können Unterschiede um das Dreifache des Kalibers bestehen; 3. von der Größe des Geschöpfes — größere Tiere besitzen dickere Muskelfasern als kleinere.
Der scharfe Abschluß der Muskelfaser gegen das umgebende Stützgewebe wird durch eine strukturlose Hülle, das Sarkolemm[78] bewirkt (Fig. 78A); dieses ist bis zu einem gewissen Grade (bei der durch die Kontraktion bewirkten Verdickung der Muskelfaser) dehnbar und ist für Funktion des Muskels von größter Bedeutung.
Die mechanische Bedeutung des Sarkolemms beruht auf seiner Verbindung mit den „Grundmembranen“ (s. u.) und auf dem Zusammenhang mit der Sehne (s. Muskelsystem); für den Stoffwechsel der Muskelfaser ist das Sarkolemm als Grenzhaut zwischen dem Saftstrom des Bindegewebes und dem Sarkoplasma wichtig.
Das Sarkolemm wird von einem Teil der Autoren als Bildungsprodukt der Muskelfaser, von andern als vom Stützgewebe gebildet betrachtet.
Die Grundlage der Substanz der Muskelfaser ist das Zytoplasma, auch hier Sarkoplasma genannt; dieses ist in ausgebildeten Muskelfasern nur mehr spärlich entwickelt und als äußerst spärliche Schichte zwischen den extrem reich entwickelten Fibrillen zu erkennen. Sein Vorhandensein läßt sich an Fettkörnchen, sogenannten Sarkosomen (interstitiellen Körnchen) und endlich an den Zellkernen erkennen. Die Zellkerne — ovoide, parallel der Längsachse der Muskelfaser gestellte Gebilde — liegen bei Säugetieren, Vögeln und Knochenfischen vorzugsweise an der Oberfläche der Muskelfaser unter dem Sarkolemm, bei den übrigen Wirbeltieren auch im Innern der Muskelfasern.
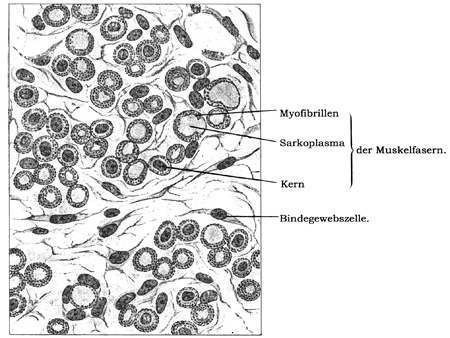
Fig. 79.
Querschnitt durch Skelettmuskelfasern eines 3monatigen menschlichen Embryos. 750mal vergr.; Technik Nr. 47, S. 132.
Diese Lage der Zellkerne wird erst während der Entwicklung allmählich erworben. Anfangs liegen die Kerne, ähnlich wie bei der Herzmuskelfaser zeitlebens, axial (s. Fig. 79). Die wandständige Lage erhalten die Kerne nach den einen im Zusammenhang mit der Längsteilung der Fasern, nach anderen durch sekundäre Verschiebungen, in der Annahme, daß sie durch die gesteigerte Fibrillenbildung notwendig werden.
Jedenfalls finden sich auch beim Erwachsenen verstreut Muskelfasern vor, deren Zellkerne axial liegen, besonders oft an den Sehnenansätzen. Auch die in den sogenannten Muskelspindeln (s. Nervenendigungen) enthaltenen Muskelfasern zeigen gewöhnlich dieses Verhalten.
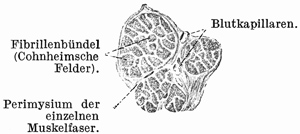
Fig. 80.
Stück eines Querschnittes des Musc. vocalis des Menschen. Vier Muskelfasern sind gezeichnet. 590mal vergr. Technik Nr. 87.
Man verwechsle die Querschnitte der Fibrillenbündel nicht mit den Querschnitten der Muskelfasern Fig. 124.
Der Sarkoplasmareichtum wechselt bei den Muskelfasern bedeutend. Im allgemeinen gilt die Regel, daß die tätigsten Muskeln (Herz-, Augen-, Kau- und Atmungsmuskeln) die meisten sarkoplasmareichen Fasern enthalten; die Muskeln mit vielen sarkoplasmaarmen Fasern kontrahieren sich schneller (weil sie fibrillenreicher sind), ermüden aber eher.
Die sarkoplasmareichen Fasern sind trübe, zeigen eine weniger regelmäßige Querstreifung, eine deutlichere Längsstreifung und haben im allgemeinen einen geringeren Durchmesser; Muskeln, die vorzugsweise aus solchen Fasern zusammengesetzt sind, sehen röter aus, was von einem im Sarkoplasma enthaltenen, dem Hämoglobin nahestehenden Farbstoffe herrührt. Bei manchen Tieren, z. B. beim Kaninchen, gibt es rote (z. B. der Semitendinosus, der Soleus) und helle oder weiße Muskeln (z. B. der Adductor magnus). Helle Muskelfasern sind zytoplasmaarm, zeigen eine deutlichere Querstreifung und im allgemeinen einen größeren Durchmesser. Beim Menschen kommen beide Faserarten in der Regel untereinander gemischt im gleichen Muskel vor.
Seine blitzartig rasche, dem Willen unterworfene Kontraktionsfähigkeit verdankt das Skelettmuskelgewebe der reichlichen Ausbildung und spezifischen Differenzierung der Muskelfibrillen. Diese prägt sich in der ausgesprochenen Längs- und Querstreifung der Muskelfasern aus.
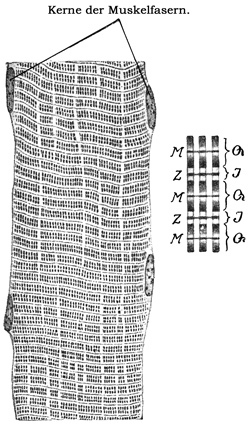
Fig. 81.
Teil einer Muskelfaser (Interkostalmuskel einer jungen Maus); rechts Schema der Querstreifung (nach M. Heidenhain). Die linke Fig. ist 750mal, die rechte viel stärker vergrößert; Technik Nr. 48b, S. 132.
Die Myofibrillen bilden sich in den Myoblasten sehr frühzeitig, zunächst als eine dünne Schichte rings um den axial gelegenen Kern (Fig. 79); zur Bildung der Fibrillen werden Plastosomen verwandt. Die ersten Fibrillen sollen sich durch Längsspaltung vermehren.
Die Fibrillen sind entweder gleichmäßig im Sarkoplasma verteilt oder eine Anzahl Fibrillen ist jeweils zu einem Längsbündel („Muskelsäulchen“) vereinigt; solche Bündelchen sind dann voneinander durch dünne Sarkoplasmaschichten getrennt. Diese Anordnung ist am besten (bei starken Vergrößerungen) an Querschnitten zu sehen, Fig. 80. Hier erscheint das Sarkoplasma in Form eines hellen Netzes, in dessen Maschen die Querschnitte der Fibrillenbündel (sie sind unter dem Namen „Cohnheimsche Felder“ bekannt) gelegen sind.
Die Fibrillen lassen sich bis zu einem gewissen Grade durch manche Reagenzien (z. B. Chromsäurelösung) isolieren, wobei die „Querstreifung“ dieser Elemente besonders gut hervortritt.
Zuweilen (selten) bricht nach Einwirkung von Alkohol die Muskelfaser statt in Fibrillen in anisotrope Querscheiben (Discs). Fibrillen und Discs können in noch kleinere, rundlicheckige, anisotrope Stückchen zerfallen, welche „primitive Fleischteilchen“ (Sarcouselements) genannt werden. Einzelne Autoren hatten deswegen die Discs, andere die primitiven Fleischteilchen als die eigentlichen Formelemente erklärt.
Über die Anordnung und Bedeutung der Querstreifung bestehen noch sehr verschiedene Ansichten, wofür unsere Unkenntnis über das Wesen des Kontraktionsvorganges als Hauptgrund anzusehen ist[79]. Wir beschränken uns hier auf die Darstellung des mit gewöhnlichen Hilfsmitteln Festzustellenden. Frisch unter dem Mikroskop betrachtet, zeigt jede quergestreifte Muskelfaser abwechselnd dunkle, breitere und helle, schmälere Querbänder. Die Substanz der dunkleren Querbänder ist doppelbrechend (anisotrope Substanz), diejenige der hellen Querbänder ist einfach brechend (isotrope Substanz).
Die genauere Analyse (Isolationen, Färbungen fixierter Präparate) ergibt eine genauere Lokalisierung der Querstreifungsphänomene (Fig. 82); danach ist die oben als anisotrope Substanz bezeichnete Struktur streng auf die Fibrillen beschränkt (man nennt sie auch Q und weiß, daß sie unter verschiedenen Kontraktionszuständen sehr wechselnd auftritt). Innerhalb der isotropen Substanz erkennt man mit stärkeren Vergrößerungen einen feinen Streifen (Z), der aber nicht auf die Fibrillen beschränkt ist, sondern als eine das ganze Sarkoplasma durchsetzende feine Membran (sog. Krausesche Grundmembran) aufgefaßt werden muß. Die an diese Membran, die selbst anisotrop ist, angrenzenden Fibrillenglieder sind isotrop (I).
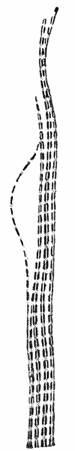
Fig. 82.
Isolierte Muskelfibrillen. 500mal vergr.; Technik Nr. 49, S. 132.
Die nach Angabe mancher Autoren das Sarkoplasma in der halben Höhe der Q-Glieder durchsetzende sogenannte Mittelmembran (M) ist noch weniger gut bekannt (s. Fig. 81, rechts).
Die Fibrillen werden offenbar durch die Grundmembranen in einer gewissen Einstellung gehalten, woraus sich auch die Parallelschaltung der Q-Glieder erklären dürfte. Erst durch diese Parallelschaltung wird ja die ganze Muskelfaser „quergestreift“.
Über die Veränderungen des Querstreifungsbildes bei der Kontraktion besteht noch keine allgemein angenommene Ansicht.
Im Gesamtaufbau der aus zahlreichen Muskelfasern bestehenden Muskeln spielt das lockere Bindegewebe die größte Rolle. Dieses ist auch der Träger der zahlreichen Blutgefäß- und Nervenverästelungen. Lymphgefäße finden sich im quergestreiften Muskelgewebe nur spärlich.
Technik.
Nr. 38. Zur Isolation glatter Muskelfasern bringt man am besten ein Stückchen Magen oder Darm eines soeben getöteten Frosches in 20 ccm 33%ige Kalilauge (Gläschen zudecken) 30-60 Minuten.
Hier zerfällt der Darm bei leichter Berührung mit einem Glasstabe. In kaltem Zimmer tritt diese Wirkung etwas später ein; versagt sie überhaupt, so ist die Lauge zu schwach gewesen (s. S. 39, b). Man übertrage von dem die Fasern enthaltenden Bodensatze einen Tropfen auf den Objektträger (die Fasern können nicht in Wasser oder Glyzerin untersucht werden, da die hierdurch verdünnte Kalilauge alsbald das Objekt zerstört), bedecke vorsichtig mit einem Deckglase und untersuche mit starker Vergrößerung (Fig. 71).
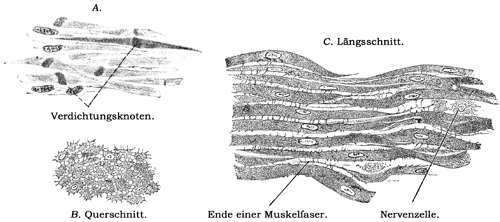
Fig. 82a.
A. Verdichtungsknoten. 360mal vergr. (Aus menschl. Samenleiter.) B. und C. Scheinbare Interzellularbrücken, 420mal vergr. B. Aus Kaninchen-, C. Aus Meerschweinchendarm. Alle Objekte waren mit Zenkers Flüssigkeit (S. 16) fixiert.
Nach Einlegen kleiner Darmstückchen in 30 ccm Müllersche Flüssigkeit auf 8-14 Tage kann man glatte Muskelfasern durch Zerzupfen isolieren, doch gelingt das nur schwer beim Menschen und auch beim Frosch, leichter dagegen beim Pferd (man nehme das untere Stück des Duodenum) und auch bei der Ratte.
Nr. 39. Das zwischen den einzelnen, glatten Muskelfasern befindliche Bindegewebe ist nur an feinen Schnitten zu sehen, die nach Studničkas Modifikation (S. 39) behandelt sind. (Nachfärben mit Parakarmin) Fig. 73. Andeutungen sieht man auch an 10 µ dicken Schnitten beliebig fixierter Objekte, die mit Pikrofuchsin (18 oder nach Nr. 20, S. 116) gefärbt und in Xylolbalsam eingeschlossen sind.
Viele Fixierungsflüssigkeiten[80] bewirken Schrumpfungen der Muskelfasern, die zu Trugbildern führen; dahin gehören die besonders an sehr feinen Schnitten zu sehenden Kunstprodukte glatter Muskelfasern (s. Fig. 82a).
Nr. 40. Stücke von menschlichen oder tierischen Herzen (mit 1 cm langen Seitenkanten) werden in Alkohol absol. oder Müller-Formol (Nr. 7, S. 16) fixiert, in Paraffin eingebettet, nach Nr. 20 gefärbt und in Xylolbalsam konserviert (§ 10,3, S. 45). Reine Querschnitte und Längsschnitte bekommt man am leichtesten an Papillarmuskeln.
Nr. 41. Myotome. In geeigneten Stadien aller Wirbeltierembryonen aufzufinden, besonders schön bei jungen Kaulquappen vom Frosch; das Bild Fig. 77 stammt von einer ca. 7 mm langen Kaulquappe, die in Zenkerscher Flüssigkeit (Nr. 8, S. 16) fixiert, nach Nr. 2, S. 71 eingebettet und mit Boraxkarmin und Bleu de Lyon (S. 42) gefärbt wurde.
Nr. 42. Quergestreifte Muskelfasern a) des Frosches. Man schneide mit flach aufgesetzter Schere in der Richtung des Faserverlaufes aus den Adduktoren eines soeben getöteten Frosches ein ca. 1 cm langes Muskelstückchen, zerzupfe („Isolieren“ S. 13) einen kleinen von der Innenfläche des Stückchens entnommenen Teil in einem kleinen Tropfen Kochsalzlösung, setze alsdann einen zweiten, größeren Tropfen derselben Flüssigkeit zu und bedecke, ohne zu drücken, das Präparat mit einem Deckgläschen. Bei schwacher Vergrößerung (50mal) sieht man die zylindrische Gestalt (Fig. 78), die verschiedene Dicke, zuweilen auch schon die Querstreifung der isolierten Muskelfasern. Bei starker Vergrößerung (240mal) sieht man deutliche Querstreifung, zuweilen blasse Kerne und glänzende Körnchen. Sehr zahlreiche Körnchen enthaltende Muskelfasern sind wahrscheinlich Zeichen reger Stoffwechselvorgänge. Da, wo die Muskelfasern quer durchschnitten sind, sieht man nicht selten die Muskelsubstanz pilzhutförmig aus dem Sarkolemmschlauche hervorquellen.
b) Des Menschen. Sehr schöne Querstreifung habe ich an menschlichen, dem Präpariersaale entnommenen Muskeln gefunden. Die Leichen waren mit Karbolsäure injiziert worden.
Will man konservieren, so färbe man unter dem Deckglase (S. 47) mit Pikrokarmin und verdränge nach vollendeter Färbung (ca. 5 Min.) dasselbe durch verdünntes Glyzerin.
Nr. 43. Sarkolemm. Man lasse zu Präparat 42a ein paar Tropfen Brunnenwasser zufließen (S. 47). Nach 2-5 Minuten sieht man bei schwacher Vergrößerung (50mal), wie sich das Sarkolemm in Form durchsichtiger Blasen (Fig. 78A) abgehoben hat; an anderen Stellen, wo sich die zerrissene Muskelsubstanz retrahiert hat, erscheint das Sarkolemm als feiner Streifen (Fig. 78A unten).
Nr. 44. Kerne. Präparat 42a anfertigen. Dann lasse man einen Tropfen Essigsäure zufließen (S. 47). Schon bei schwacher Vergrößerung erscheinen die geschrumpften, aber scharf konturierten Kerne als dunkle, spindelförmige Striche (Fig. 78B).
Nr. 45. Enden der Muskelfasern. Man lege einen frischen Froschgastrocnemius in 20 ccm konzentrierte Kalilauge und behandle ihn weiter wie Nr. 38a. Man sieht bei schwacher Vergrößerung die Enden der Muskelfasern und zahlreiche bläschenförmig gewordene, glänzende Kerne (Fig. 78C).
Nr. 46. Verästelte Muskelfasern. Man schneide einem soeben getöteten Frosche die (vorn am Unterkiefer angewachsene, nach hinten freie Zunge aus und bringe sie a) in 20 ccm konzentrierte Salpetersäure und ca. 5 g chlorsaures Kali[81] 24 Stunden,
dann hebe man die Zunge mit Glasstäbchen vorsichtig heraus und lege sie
b) in ca. 30 ccm dest. Wasser, das man öfter wechselt.
Hier kann die Zunge bis zu 8 Tagen liegen bleiben, aber auch schon nach 24 Stunden verarbeitet werden. Zu dem Zwecke bringe man dieselbe in ein zur Hälfte mit Wasser gefülltes Reagenzgläschen und schüttle einige Minuten: die Zunge zerfällt dabei. Nun gieße man das ganze in ein Schälchen und bringe nach ca. 1 Stunde oder später etwas von dem unterdessen gebildeten Bodensatze in einem Tropfen Wasser auf den Objektträger. Hier kann man mit Nadeln noch etwas isolieren, was jedoch in den meisten Fällen überflüssig ist. Schwache Vergrößerung, Pikrokarminfärbung unter dem Deckglase (S. 47). Konservieren in verdünntem Glyzerin (S. 44) (Fig. 78D).
Nr. 47. Querschnitte embryonaler Skelettmuskelfasern. Fig. 79 stammt aus Schnitten durch den Kopf eines ca. 10wöchigen menschlichen Embryo; Fixation: Zenkersche Flüssigkeit (Nr. 8, S. 16), Einbettung: Paraffin, Färbung: Hansens Hämatoxylin (Nr. 1, S. 32), Eosin, Phosphormolybdänsäure, Methylblau nach Nr. 20, S. 116.
Nr. 48. Querstreifung. Um gut gestreckte Muskelfasern zu bekommen, fixiere man erst etwa 2 Stunden nach dem Tode; längere parallelfaserige Muskeln spanne man auf dünnen Brettchen auf und fixiere in Zenkerscher Flüssigkeit oder Sublimat-Kochsalzlösung (Nr. 8, 10, S. 16). Dünne Paraffinschnitte, die parallel zur Längsrichtung der Fasern angelegt sind, färbe man
a) mit Eisenhämatoxylin nach Heidenhain (Nr. 13, S. 40); bei geeigneter Differenzierung bleibt Q gefärbt;
b) mit Hansens Hämatoxylin, Eosin, Phosphormolybdänsäure, Methylblau nach Nr. 20, S. 116; hierbei färben sich in der Regel Z und M, während die Fibrillen in ganzer Länge rot gefärbt werden; manchmal differenziert sich bei dieser Färbung außer Z und M auch Q.
Nr. 49. Fibrillen. Man lege einen frischen Froschmuskel in 20ccm 0,1%ige Chromsäure (S. 5). Nach ca. 24 Stunden erhält man beim Zerzupfen in einem Tropfen Wasser leicht Fasern, deren Enden in Fibrillen aufgefasert sind (Fig. 82). Will man ein Dauerpräparat herstellen, so lege man den Muskel a) in destill. Wasser 1 Stunde,
man den Muskel a) in destill. Wasser 10-20 Stunden,
dann Zerzupfen oder Aufbewahren in 70%igem Alkohol beliebig lange bis zum Verarbeiten. („Isolieren“ s. S. 13.)
Schöne Fibrillen liefern Muskeln nach Techn. Nr. 6 (S. 73) fixierter Molchlarven, die man mit Boraxkarmin durchgefärbt hat (S. 34). Stückchen solcher Muskeln werden aus absolutem Alkohol in Karbolxylol übertragen und in einem Tropfen dieser Flüssigkeit auf dem Objektträger zerzupft. Man prüfe zuerst mit schwacher Vergrößerung ohne Deckglas, ob einzelne Fibrillen sichtbar sind, sauge dann das Xylol mit Filtrierpapier ab und konserviere in Xylolbalsam.
IV. Nervengewebe.
Das Nervengewebe ist in seiner Gesamtheit als Abkömmling des Epithels zu betrachten (s. S. 82). Die Absonderung des Bildungsmaterials für dieses hochdifferenzierte Gewebe fällt in eine sehr frühe Embryonalperiode. Es entsteht aus dem äußeren Keimblatt.
In der frühen Abgrenzung des Bildungsmaterials innerhalb der Keimanlage gleicht das Nervengewebe dem in ganz anderer Richtung hochdifferenzierten Skelettmuskelgewebe. Über die wichtigsten Bildungsstufen des Nervengewebes (Medullarplatte, -rinne, -rohr, Ganglienleiste usw.) vgl. die Lehrbücher der Entwicklungsgeschichte.
Reizaufnahme, -weiterleitung und -übertragung, die wichtigsten Aufgaben des Nervengewebes, sind bei einfachst gebauten, sogenannten einzelligen Organismen, Eigenschaften der ganzen Zelle, die allerdings durch mannigfache Sondereinrichtungen besonders dafür ausgestattet sein kann.
Bei Metazoen ist stets die die äußere Körperoberfläche bildende Substanz der Ausgangsort für die Bildung eines spezifisch differenzierten Nervengewebes.
Die gesteigerte Reizbarkeit, als Folge der Ausbildung besonders gut auf Reize ansprechender Organzellen, bewirkte wohl eine Versenkung des Nervengewebes unter die Oberfläche in eine geschütztere Lage; die Vergrößerung und die Komplizierung im Aufbau des Organismus machte eine erhebliche Ausdehnung des reizleitenden Systems notwendig.
So finden wir endlich den Wirbeltierorganismus allenthalben von einer Substanz durchzogen, die gegenüber allen anderen Geweben durch eine außerordentlich gesteigerte Reizbarkeit, deren Wesensart wir nicht kennen, ausgezeichnet ist. Diese Nervensubstanz ermöglicht die Verknüpfung der örtlich und substantiell differenten Teile des Körpers zu einem Organismus. Die hierdurch gegebene, regulatorische Funktion wird verständlich, wenn wir sehen, daß die nervöse Substanz in fast allen Geweben und Gebieten des Körpers Aufnahmeapparate für Reize besitzt.
Diese sogenannten sensiblen und sensorischen Nervenendigungen werden, wie alle speziellen Einrichtungen, später besprochen.
Auf dem Wege von längeren oder kürzerer Bahnen nervöser Substanz, einem Teil der sogenannten Nervenfasern, werden die Reize den nervösen Zentren zugeführt, die wir in den verschiedensten Regionen des Rumpfes antreffen (periphere Ganglien), in erster Linie aber als Rückenmark und Gehirn kennen. Hier gegebene, hochkomplizierte Einrichtungen müssen als Hauptorte der regulierenden Funktion der Nervensubstanz betrachtet werden.
Von diesen Zentren aus ziehen besondere (zentrifugal funktionierende) Leitungsbahnen, ein anderer Teil der Nervenfasern, in alle Körperregionen; an den Enden dieser Nervenfasern (besonders an Muskeln, Drüsen) werden die Impulse zu den mannigfachsten Verrichtungen des Körpers gegeben.
Die enorme Reizbarkeit der gesamten Nervensubstanz mag es mit sich bringen, daß sie in allen Teilen von einem nur ihr eigenen Hüllmaterial, der Neuroglia[82], umgeben ist. Diese ist eine zwischen das Bindegewebe und die nervöse Substanz eingeschaltete Hülle, die vermutlich ungeeignete Reize vom Nervenzytoplasma abhält und besonders den Stoffwechsel der Nervensubstanz reguliert.
Wie die eigentliche, nervöse Substanz und die Neuroglia in inniger Gemeinschaft zentrale wie periphere Teile des Nervensystems aufbauen, so entstammen beide aus der gemeinsamen Bildungsformation, der Neuralplatte. In dem aus dieser entstehenden Neuralrohr bilden die zunächst indifferenten Epithelzellen den Ausgang für Neuroblasten und Glioblasten. (Inwieweit Neuroblasten und Glioblasten primär plasmodiale Zusammenhänge besitzen, muß noch genauer bestimmt werden.) Die fertige Glia ist ein alle gröberen und feineren Teile der nervösen Substanz einschließendes, schwammartiges Plasmodium; ob die aus den Neuroblasten hervorgehende, eigentliche nervöse Substanz in getrennte Zellgebiete gesondert ist, oder ob auch sie ein plasmodiales Gefüge darstellt, ist noch nicht entschieden. Die letztgenannte Möglichkeit hat aber die größere Wahrscheinlichkeit für sich.
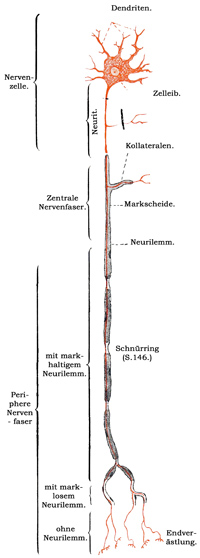
Fig. 83.
Schematische Darstellung eines Neuron.
Als Nerven„zelle“ bezeichnet man gewöhnlich einen kernhaltigen Teil der Nervensubstanz, einschließlich der unmittelbar anschließenden Fortsätze (s. Fig. 83), als Nervenfasern dünn ausgezogene, kürzere oder längere Teile. Mit jeder Nervenzelle ist eine Nervenfaser untrennbar verbunden. Dem Zellbegriffe, wie wir ihn bei anderen Geweben anwenden, entspricht im Nervengewebe das, was man als Neuron bezeichnet; ein Neuron umfaßt eine Nervenzelle mit sämtlichen ihr verbundenen Fortsätzen.
Dazu gehören also: 1. der den Kern enthaltende Zelleib (Fig. 83), 2. dessen Neurit (Nervenfortsatz); dieser leitet Reize nach anderen Nervenzellen oder an periphere Organe weiter; 3. die Dendriten[83]; diese Fortsätze nehmen Reize von anderen Nervenzellen oder von der Peripherie auf. Die Neuriten sind in der Regel länger und gehen in eine Nervenfaser über, deren Achsenzylinder sie bilden; die Dendriten sind gewöhnlich sehr viel kürzer und verästeln sich nahe am Zelleib (der Dendrit der Spinalganglienzellen ist jedoch auch lang und geht wie ihr Neurit in den Achsenzylinder einer Nervenfaser über).
Bei der Länge, die besonders die als Verlängerung eines Neuriten zu denkende Nervenfaser erreichen kann, ist es in der Regel unmöglich, ein Neuron in seiner Gesamtheit morphologisch darzustellen. Zahlreiche physiologische und pathologische Erfahrungen haben aber die Berechtigung des Neuronbegriffes als einer Nerveneinheit bewiesen.
Wird z. B. der Zusammenhang zwischen Zelle und Faser unterbrochen, so stirbt die Faser zellulifugalwärts von der Unterbrechungsstelle an ab, eine Neubildung kann nur vom Achsenzylinder des mit der Nervenzelle in Verbindung gebliebenen Stumpfes aus erfolgen.
Trotz dieser scheinbaren Einheitlichkeit und Selbständigkeit eines Neurons bestehen höchstwahrscheinlich doch zytoplasmatische Verbindungen mit anderen Neuronen, auf denen die Fortleitung der nervösen Erregung durch „Kontinuität“ geschieht. Die Vorstellung, daß die Neuronen völlig unabhängig voneinander sind, und daß die Erregungsleitung jedesmal durch „Kontakt“ von einem Neuron zum anderen überspringt, ist sowohl morphologisch als physiologisch weniger gut begründet.
A. Nervenzellen.
Die Nervenzellen (Ganglienzellen) finden sich in den Ganglien[84], in Sinnesorganen, im Verlaufe sowohl zerebrospinaler als sympathischer Nerven, hauptsächlich aber im Zentralnervensystem
.
Sie sind von sehr wechselnder Größe (4-135 µ und darüber) und von mannigfacher Gestalt. Es gibt kuglige und spindelförmige Ganglienzellen; sehr häufig ist eine unregelmäßige Sternform, d. h. das Zytoplasma sendet mehrere Fortsätze aus. Ganglienzellen mit zwei Fortsätzen heißen bipolare, solche mit mehreren Fortsätzen multipolare Ganglienzellen (Fig. 84); es gibt auch unipolare Ganglienzellen; solche finden sich im Sympathikus von Amphibien und allgemein in der Riechschleimhaut; sie besitzen in der Tat nur einen einzigen Fortsatz.
Die Nervenzellen der Spinalganglien dagegen sind nur scheinbar unipolar; in entwicklungsgeschichtlichen Epochen bipolar, werden sie dadurch unipolar, daß der die Ursprungsstelle beider Fortsätze umfassende Teil der Zelle sich zu einem dünnen Stück auszieht, von welchem alsdann unter stumpfem oder rechten Winkel die divergierenden Fortsätze abbiegen (Fig. 84, 1, 2). Solche Zellen werden Zellen mit T-förmigen (oder mit Y-förmigen) Fasern genannt.
Apolare, also fortsatzlose Nervenzellen sind entweder Jugendformen oder durch Abreißen der Fortsätze beim Isolieren entstandene Kunstprodukte.
Das Zytoplasma der Nervenzelle, besonders kompliziert gebaut, umschließt einen sehr charakteristischen, bläschenförmigen, bei den größeren Formen auffallend chromatinarmen Kern, der ein ansehnliches Kernkörperchen einschließt. Die Teilungsfähigkeit der Nervenzellen geht in frühen Wachstumsperioden offenbar verloren; Zentralkörperchen sind auch nur in jugendlichen Formen nachgewiesen. Offenbar gehen hier hoher Differenzierungsgrad und Vermehrungsunfähigkeit parallel.
Nach Verletzungen, denen Nervenzellen zum Opfer gefallen sind, werden bei allen höheren Wirbeltieren keine Nervenzellen neugebildet; vielmehr fällt die Funktion der betreffenden Nervenzellen dauernd aus, wenn sie nicht, was in bestimmten Fällen vorkommt, von anderen übernommen wird.
Nach neuesten Untersuchungen werden bei verschiedenen Säugetieren mitotische Vermehrungen junger Ganglienzellen nur wenige Wochen nach der Geburt noch angetroffen. Bilder, die an eine amitotische Teilung denken lassen, finden sich auch später noch.
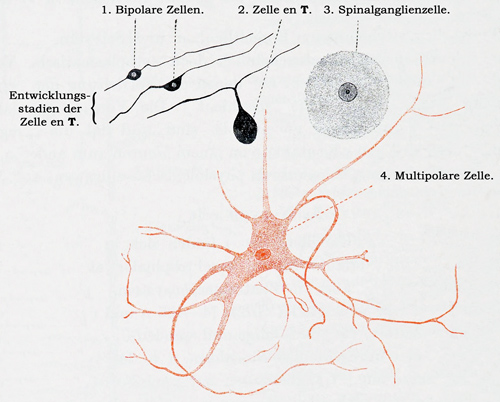
Fig. 84.
Verschiedene Formen von Nervenzellen. 236mal vergrößert. 1. Vom Spinalganglion eines 6tägigen Hühnerembryo, 2. eines Kalbes. Technik Nr. 99. 3. Vom Menschen, Neurit abgerissen. Technik Nr. 50. 4. Aus dem menschlichen Rückenmark. Technik Nr. 51, S. 148.
Unter den Strukturen des Zytoplasmas (auch Neuroplasma genannt) sind praktisch am wichtigsten die sogenannten Nißlschen Körperchen („basisch färbbare Substanzen“, Tigroid). Dies sind streng auf das Zytoplasma beschränkte, mit gewissen Farbstoffen darstellbare bald rundliche, bald eckige Körnerschollen, bald Spindeln oder Streifen (Fig. 85). Treffen irgendwelche Reize die Nervenzelle, so sind sie es zuerst, an deren Anordnung man Veränderungen erkennt; hierbei ist allerdings eine ganz exakte Beachtung der Nißlschen Methodik erforderlich.
Am charakteristischsten ist die Anordnung der Nißlschen Körperchen in den motorischen Nervenzellen (z. B. im Vorderhorn des Rückenmarkes, Fig. 85); das Bild, welches hier die gefärbten Zellen darbieten, hat zur Bezeichnung Tigroid (= tigerähnlich) geführt, welche dann in mißverständlicher Weise auch auf die Nißl-Körper anderer Nervenzellen übertragen wurde, welche diese Anordnung nicht besitzen (z. B. Spinalganglienzellen, die meisten Rindenzellen).
Die Natur und die funktionelle Bedeutung der Nißlschen Körper ist noch nicht geklärt. An der Reizleitung selbst sind sie offenbar nicht unmittelbar beteiligt; wahrscheinlich sind die Nißl-Körper hochwertige Nahrungssubstanzen, also paraplastische Stoffe, die bei starker Inanspruchnahme der Zellen verbraucht werden. Dafür spricht, daß sie bei Überanstrengung, bei vielen Erkrankungen, auch im höheren Alter Veränderungen bis zum völligen Schwunde zeigen.
Nach neueren Angaben sollen Plastosomen an der Bildung der Nißlschen Körper teilnehmen; nach anderen Autoren sollen diese Substanzen aus dem Zellkerne stammen und bei der Chromatinarmut der Zellkerne eine Art „Zytochromatin“ darstellen.
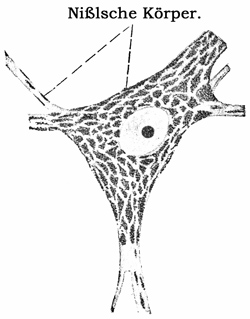
Fig. 85.
Motorische Nervenzelle des Rückenmarks (Vorderhorn) eines Kindes. 430mal vergr. Technik Nr. 52, S. 148.
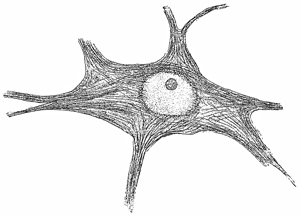
Fig. 86.
Nervenzelle aus einem Schnitt durch das Rückenmark eines jungen Hundes. Präp. von Ramon y Cajal. 600mal vergr. Technik nach 9, S. 38.
Auch in Nervenzellen finden sich außerdem mannigfache andere körnige Einschlüsse. Unter ihnen scheinen Plastosomen, die hier auch als Neurosomen bezeichnet werden, eine (noch nicht geklärte) Rolle zu spielen.
In vielen Ganglienzellen entstehen oder werden abgelagert: Pigmente. Auch diese treten in der Form verschieden großer rundlicher Einschlüsse auf. Dunkle Pigmente, sogenannte Melanine, finden sich nur in bestimmten Zelltypen (Subst. nigra, Locus coeruleus), während ein gelbliches Pigment, das eine Reihe von Fettreaktionen gibt und daher als Lipoid aufzufassen ist, mit zunehmendem Alter in fast allen Ganglienzellen angetroffen wird. Man bezeichnet dies letztere Pigment auch als Abnutzungspigment.
Als besonders wichtig werden von vielen Forschern die sogenannten Neurofibrillen angesehen, die in der Tat ein Formelement sind, das nicht nur den Nervenzellen, sondern anscheinend sämtlichen Teilen der nervösen Substanz zukommt.
Die Neurofibrillen entstehen, unter Anteilnahme von Plastosomen, in den Ganglienzellen zuerst; von hier aus schreitet ihre Bildung peripherwärts in die Fortsätze fort.
Die Fibrillen (Fig. 86) bilden in den Fortsätzen nach Ansicht mancher Autoren sehr langgestreckte Netze, nach anderen Autoren handelt es sich dabei nicht um Fibrillenanastomosen, sondern um Überschneidungen; auch im Zellkörper durchkreuzen sich die Fibrillen in den verschiedensten Richtungen, wobei sie bei manchen Nervenzelltypen am Kern ein dichtes Gitter bilden. Die Fibrillen können bald in Bündel geordnet von einem Fortsatz kommen, die Zelle einfach durchsetzen und sich teilend in mehreren anderen Fortsätzen austreten, bald umgekehrt aus verschiedenen Fortsätzen sich sammelnd in einem Fortsatz die Zelle verlassen.
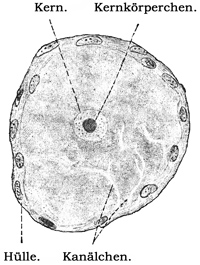
Fig. 87.
Spinalganglienzelle einer erwachsenen Katze. 430mal vergr. Technik Nr. 53. S. 149.
Man hat die Fibrillen als diejenige Struktur betrachtet, in der die nervöse Erregung fortgeleitet wird; glaubhafter ist die Annahme, daß wir in den Fibrillen einen hochwichtigen Stützapparat vor uns sehen müssen, daß die nervöse Erregung dagegen in dem wohl flüssig gebliebenen Protoplasma (im engeren Sinne, s. S. 57) abläuft.
Umstritten, teilweise als Kunstprodukte gedeutet, sind mannigfache andere Strukturen des Ganglienzellenzytoplasmas, unter denen die sogenannten Holmgrenschen Kanälchen (Fig. 87) (Trophospongium) und der Apparato reticolare interno (Fig. 88) hervorgehoben werden sollen. Die ersteren wurden als Ernährungsbahnen für den großen Zelleib der Ganglienzellen betrachtet; der Apparato reticolare interno wird auch inneres Golgi-Netz genannt; er hat nichts zu tun mit dem äußeren Golgi-Netz, das der Nervenzellenoberfläche aufliegt und das von den einen Autoren als gliöses Gebilde, von den anderen als ein Apparat für die Reizübertragung angesehen wird.
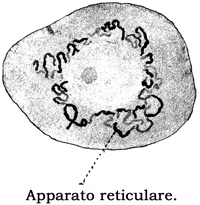
Fig. 88.
Spinalganglienzelle eines Kaninchens. 1000mal vergr. Technik Nr. 54, S. 149.
Die Fortsätze der Nervenzellen sind von zweierlei Art. Man unterscheidet — am besten an multipolaren Nervenzellen —: 1. Einen Fortsatz, den Neurit (Fig. 89); der einzige seiner Art wächst er aus der ursprünglich rundlichen Nervenzelle zuerst hervor und ist durch sein helles, glattrandiges Aussehen charakterisiert; er leitet zellulifugal. 2. Viele Fortsätze, die Dendriten (Zytoplasmafortsätze), Fig. 83; sie wachsen später aus den Nervenzellen hervor, sind dicker, körnig oder feinstreifig; sie leiten zellulipetal. Die Dendriten teilen sich wiederholt und können so ein außerordentlich reiches Astwerk bilden, dessen feinste Zweige alle frei enden (Fig. 89); dadurch erfährt der Zellkörper eine enorme Oberflächenvergrößerung, welche einerseits die Ernährungsfähigkeit, andererseits die Empfänglichkeit des Zellkörpers für Nervenreize — diese werden durch anliegende Endverästelungen von Neuriten ausgeübt — erhöht. Die verschiedenen Fortsätze der Nervenzellen lassen sich im Nißl-Bild daran erkennen, daß in den Dendriten Nißl-Körper vorhanden sind, während sie dem Neuriten und der Stelle des Zelleibes (Ursprungskegel), von der der Neurit entspringt, fehlen.
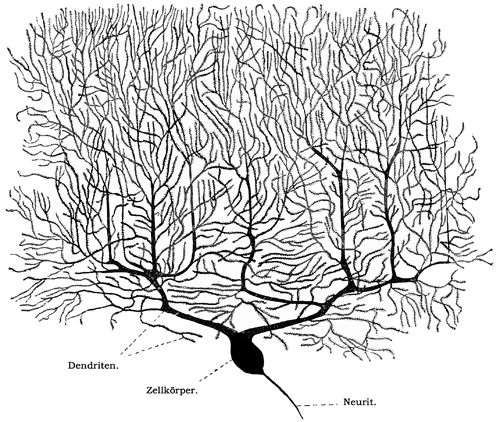
Fig. 89.
Nervenzelle („Purkinjesche Zelle“) aus einem Schnitt durch die menschliche Kleinhirnrinde. 180mal vergrößert. Technik Nr. 99, c.
Bei bipolaren Ganglienzellen, deren beide Fortsätze zu Achsenzylindern markhaltiger Nervenfasern werden (Spinalganglienzellen von niederen Wirbeltieren und Embryonen), entspricht der zentrale, gegen das Zentralnervensystem verlaufende Fortsatz dem Neuriten, der peripherische Fortsatz aber einem Dendriten. Diese Auffassung wird auch gestützt durch die Beobachtung, daß bei den bipolaren Zellen des N. cochlearis der peripherische Fortsatz ganz nach Art eines Dendriten sich entwickelt und erst später die Charaktere einer Nervenfaser annimmt. Demgemäß entspricht auch der peripherische Fortsatz einer T-Zelle einem lang ausgezogenen Dendriten; dieser Fortsatz leitet ja auch zellulipetal.
Nach dem Verhalten des Neuriten kann man zwei Typen von Ganglienzellen unterscheiden.
1. Deitersscher Typus, Zellen mit langem Neurit, der zum Achsenzylinder einer markhaltigen Nervenfaser wird und nach langem, oft viele Zentimeter betragendem Verlaufe in feinster Verästelung endet.
Während eines Verlaufes gibt ein solcher Neurit eine Anzahl feiner, sich weiter verzweigender Seitenästchen („Kollateralen“, „Paraxonen“) ab; gar nicht selten kommt auch eine Teilung in zwei gleiche Neurite vor (siehe Rückenmark „Plurifunikuläre Zellen“).
2. Golgischer Typus, Zellen mit kurzem Neurit, der sich schon in der Nähe der Zelle unter fortwährender Teilung in ein nervöses Astwerk auflöst (Fig. 90).
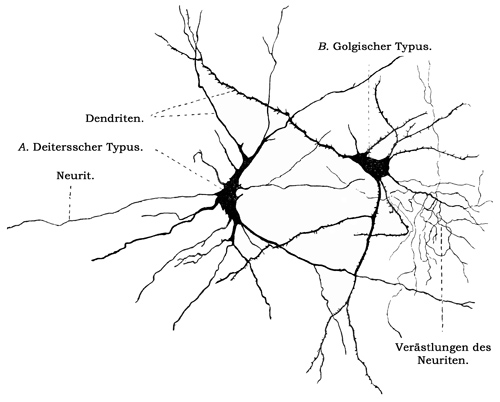
Fig. 90.
Zwei Nervenzellen 200mal vergrößert. A Aus einem Schnitt durch das Rückenmark eines 6monatigen menschlichen Embryo. B Aus einem Schnitt durch das Gehirn einer Katze. Technik Nr. 8 u. 99, a.
B. Neuroglia.
Früher ausschließlich als Stützgewebe des zentralen Nervensystems angesehen, umhüllt gliöses Gewebe auch peripher gelegene Nervenzellen und -fasern allenthalben. Im zentralen Nervensystem ist die Neuroglia ein äußerst fein verzweigtes Plasmodium (Fig. 91), das mit zahlreichen Zellkernen versehen ist. An den kernhaltigen Orten treffen sich zahlreiche Balken des Gliaplasmodiums, so daß in geeigneten Präparaten reich verzweigte Zellen die Elemente der Neuroglia zu bilden scheinen.
Unter dem Einfluß der Silberimprägnationsmethode von Golgi (s. S. 36) betrachtete man die Glia als ein aus solchen, nicht miteinander in Verbindung stehenden Zellen zusammengesetztes Gewebe. Man unterscheidet an Golgi-Präparaten (Fig. 92) a) Kurzstrahler, mit kürzeren stark verästelten Fortsätzen; sie kommen vorzugsweise an Orten vor, wo viele Ganglienzellen zusammenliegen (graue Substanz); b) Langstrahler, die häufigere Form, von deren kleinem Zellkörper außer kurzen auch viele längere, wenig verästelte Fortsätze ausgehen. Die letzteren finden sich hauptsächlich dort, wo viele Nervenfasern beisammen liegen (weiße Substanz).
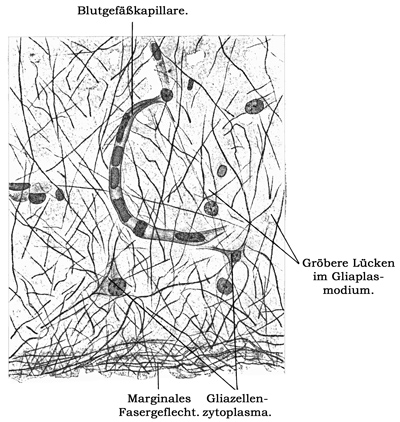
Fig. 91.
Neuroglia an der Oberfläche des Großhirns. Zytoplasmatisches Plasmodium mit Kernen und Fasern. (Nach einem Präparat von Dr. Spatz. Holzers Gliafärbungsmethode.) 500mal vergrößert. Technik Nr. 55, S. 149.
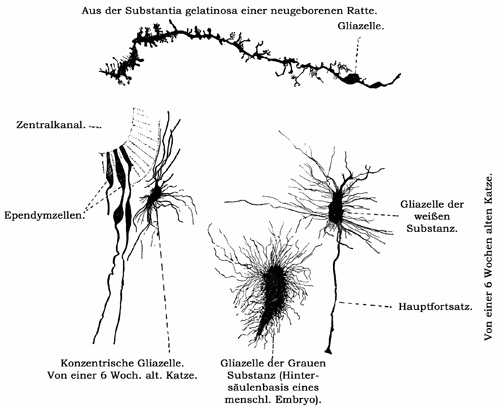
Fig. 92.
Gliazellen aus dem Rückenmark. 280mal vergrößert. Technik Nr. 8, S. 36.
In zytoplasmatischen Strängen (nach anderen Autoren auch außerhalb von diesen) verlaufen äußerst feine Fibrillen (Fig. 91), die offenbar zur Stützung des plasmodialen Gewebes dienen.
Ebenfalls infolge einer einseitigen Methodik (Weigertsche Gliafärbung) nahm man zunächst an, daß die Fibrillen unabhängig vom Zytoplasma der Gliazellen, also in einer Art von Interzellularsubstanz verliefen.
Die Gliafibrillen zeigen in verschiedenen Teilen des Zentralorgans bemerkenswerte Unterschiede sowohl bezüglich ihrer Anordnung als ihrer Reichhaltigkeit.
Die Neuroglia ist für das Nervengewebe als Stütz- und Ernährungsgewebe von höchster Bedeutung; man könnte auch daran denken, daß sie die in den Nerven- und Dendritenfortsätzen verlaufenden Leitungsbahnen isoliere. Der Abschluß der Nervenzellen von der direkten Berührung mit dem erst in einem späteren Entwicklungsstadium von außen ins nervöse Gewebe eindringenden Gefäßbindegewebsapparat wird durch Verdichtungen des Gliazytoplasmas an den Gefäß- bzw. Bindegewebsoberflächen gewährleistet. Hier bilden gliöse Grenzmembranen allenthalben eine scharfe Abgrenzung, Grenzscheiden, die aber vielleicht auch dem Stoffaustausch dienen.
Die wichtige Rolle, die das Gliaplasmodium für den Stoffwechsel des Nervengewebes spielt, kommt schon normalerweise, besonders in der Zeit der Markbildung (s. S. 144) darin zum Ausdruck, daß besonders stark beanspruchte Teile des Plasmodiums unter Aufspeicherung von Stoffwechselprodukten sich aus dem plasmodialen Verbande loslösen; man bezeichnet diese dann auftretenden freien Zellformen als „Körnchenzellen“. Unter pathologischen Reizzuständen treten diese Formen zahlreicher auf. Dieser Loslösungsprozeß ist mit ähnlichen Vorgängen im Bindegewebe (ruhende Wanderzellen, s. S. 93 und Retikulumzellen s. S. 99) in Parallele zu stellen.
Auch sonst spielt die Glia in der Pathobiologie des Nervengewebes eine große Rolle; bei vielen Schädigungen des Nervengewebes wird nämlich der empfindlichere, eigentlich nervöse Gewebsbestandteil zur Degeneration gebracht, während die Glia erhalten bleibt, ja sogar zu wuchern beginnt, wobei sie anscheinend bei der Beseitigung der nutzlos gewordenen, nervösen Substanz intensiv beteiligt ist. Als Endprodukt entsteht ein dichtes, von zahlreichen Fibrillen durchsetztes Narbengewebe (Glianarbe).
Ganglienzellen, die außerhalb des Zentralnervensystems liegen, werden von besonderen Kapseln umschlossen, deren gliöse Natur sehr wahrscheinlich ist. Die Kapselzellen (also periphere Gliazellen) liegen der Ganglienzelle unmittelbar an und grenzen nach außen an eine dem Bindegewebe angrenzende membranartige Hülle (Fig. 87).
Wie die peripheren Ganglienzellen, so entstammen auch die zu den Kapselzellen werdenden Gliabestandteile aus der gemeinsamen Anlage des Nervensystems, aus der sie nach der Peripherie auswandern. Ganz ähnlich liegen die Verhältnisse auch bei den Nervenfasern und deren gliösen Bestandteilen.
Von der Neuroglia zu unterscheiden sind endlich die Ependymzellen[85]; dies sind die Reste des ursprünglichen, indifferenten Mutterbodens, aus welchem während der ersten Entwicklungsstufen Glio- und Neuroblasten entstanden sind. Sie kleiden die Ventrikelhohlräume des Gehirns und den Zentralkanal des Rückenmarkes aus; ihre dem Lumen zugekehrte Oberfläche ist in der Jugend mit Härchen besetzt, ihr zylindrischer Körper läuft in einen langen Fortsatz aus (Fig. 92).
In einem bestimmten Stadium der embryonalen Entwicklung, indem es bereits zur Glio- und Neuroblastenbildung gekommen ist, bilden die Ependymzellen mit ihren hier noch bis zur Peripherie reichenden Fortsätzen ein später bis auf gewisse Reste (Septum posterius des Rückenmarks) verschwindendes Gerüst.
Bei Amphibien sollen auch noch bei Erwachsenen nach Verletzungen von den Ependymzellen sowohl Glia als Nervenzellen neu gebildet werden können.
C. Nervenfasern.
Sämtliche Nervenfasern sind Fortsätze von Nervenzellen; man bezeichnet aber als Nervenfasern nur die langen Fortsätze der Nervenzellen.
Viele Nervenzellen haben dementsprechend nur eine ihnen zugehörige Nervenfaser; dies sind z. B. die meisten im zentralen Nervensystem gelegenen Zellen des multipolaren Typus. Andere, wie z. B. die Zellen der Spinalganglien haben zwei zugehörige Nervenfasern, von denen die eine aus der Peripherie eine Erregung nach der Zelle, die andere die Erregung aus der Zelle in das zentrale Nervensystem überleitet (s. auch S. 139).
Die Länge der Nervensubstanzstrecke, die wir als Nervenfaser bezeichnen, richtet sich nach der Entfernung zwischen dem Sitz der zugehörigen Nervenzelle und der Endaufsplitterung. Die Nervenfasern, die Teile des Fußes mit dem Rückenmarke zu verbinden haben, erreichen etwa die Länge eines Meters.
Alle Nervenfasern sind in ihrer ganzen Ausdehnung von Neuroglia begleitet, die die nervöse Substanz umscheidet und vom Bindegewebe isoliert.
Die so gebildeten Hüllen sind sehr verschieden kompliziert gebaut, auch bieten sie ein verschiedenartiges Aussehen dar, je nachdem sie innerhalb des zentralen Nervensystems oder außerhalb desselben verlaufen. In dieser Hinsicht kommen alle Möglichkeiten vor. Die Nervenfasern können ganz oder teilweise im zentralen, ganz oder teilweise im peripheren Nervensystem verlaufen. Im zentralen Nervensystem bildet die Gesamtmasse der Fasern die sogenannte weiße Substanz. Von einer Nervenfaser, die sowohl dem zentralen wie dem peripheren Nervensystem angehört, bezeichnen wir das zentrale Stück ebenso wie eine ganz im Zentralnervensystem verbleibende Nervenfaser als zentrale Nervenfaser, dagegen den das Zentralorgan überschreitenden Abschnitt als periphere Nervenfaser. Die peripheren Nervenfasern sammeln sich zu den peripheren Nerven (s. Organe des Nervensystems).
Die nervöse Substanz bildet in der Nervenfaser den Achsenzylinder; eine weiche, sehr wasserreiche Substanz, das sogenannte Neuroplasma (Axoplasma), in dem feinste Fibrillen verlaufen (s. Fig. 83 und 94). Das Axoplasma der Nervenfaser enthält, wie das Zytoplasma der Nervenzelle, Neurosomen.
Die Fibrillen bilden nach den einen Autoren langgestreckte Netze, nach anderen sind derartige Bilder auf Überschneidungen der Fibrillen zurückzuführen.
Während wir bei den meisten Nervenzellen am Bau und der Verzweigungsart der Fortsätze die Leitungsrichtung (d. h. Dendriten und Neuriten) unterscheiden können, ist dies bei dem Achsenzylinder der Nervenfasern nicht möglich. Wir können sensible und motorische Nerven morphologisch nicht unterscheiden.
In nicht sehr gut fixierten Präparaten schrumpft der Achsenzylinder zu einem dünnen Strange zusammen, so daß er durch eine relativ weite Spalte von der ihn umgebenden Hülle getrennt scheint (das kommt besonders oft bei Querschnitten durch Nerven zur Beobachtung).
Der Achsenzylinder ist die unmittelbare Fortsetzung eines Neuriten (bei den Spinalganglienzellen auch des Dendriten) von Nervenzellen und endigt im zentralen Nervensystem in sehr verschiedener Weise in der Umgebung anderer Ganglienzellen, in der Peripherie in noch gesteigerter Mannigfaltigkeit als sensible oder motorische Nervenendigung (s. Organe des Nervensystems) an den Endorganen.
In diese Endigungen setzen sich sowohl das Neuroplasma wie die Fibrillen fort.
Während sich also bezüglich der nervösen Substanz ein Unterschied zwischen peripherer und zentraler Nervenfaser nicht feststellen läßt, zeigt sich die gliöse Substanz in beiden Fällen morphologisch, aber nicht prinzipiell verschieden. Der Achsenzylinder der zentralen Nervenfaser ist in das Zytoplasma des allgemeinen Gliaplasmodiums eingebettet, in das er in frühen Entwicklungsstadien eingewandert ist. In diesem Zustande finden wir ihn beim Neugeborenen und auf kurze Strecken (bei kurzen Neuriten, am Ursprunge aus den Zellen) beim Erwachsenen.
Solche zentrale Nervenfasern hat man bisher vielfach als „nackt“ bezeichnet, weil man die Gliaumhüllung nicht zur Nervenfaser rechnete. Da aber (s. u.) die Schwannsche Scheide der peripheren Nervenfaser nichts anderes ist als eine Gliahülle, so ist die Bezeichnung jener nur scheinbar hüllenlosen, in Wirklichkeit aber überall von Glia umgebenen Faserstrecken im Zentralorgan als „nackt“ irreführend.
Die gliöse Hülle macht sich in der zentralen Faser erst deutlich bemerkbar, wenn, was bei fast allen längeren zentralen Nervenfasern der Fall ist, in ihr rings um den Achsenzylinder herum eine Masse eingelagert ist, die als Nervenmark (Myelin) bezeichnet wird. Diese Einlagerung kann verschieden stark ausgebildet sein, im allgemeinen besitzen aber die längsten Achsenzylinder auch den breitesten Markmantel, den man auch als besondere Markscheide zu bezeichnen pflegt.
Ebenso wie bei den zentralen unterscheiden wir auch unter den peripheren Nervenfasern marklose und markhaltige; auch hier hängt die Zusammensetzung der Hülle von dem Zustande der gliösen Substanz ab, die wir als Neurilemm[86] (Schwannsche Scheide) bezeichnen.
Bei der marklosen peripheren Nervenfaser bildet das Neurilemm eine dünne Scheide um den Achsenzylinder, wobei die zytoplasmatische Substanz nur in der Umgebung des länglichen platten Zellkernes deutlich erkennbar ist, während gegen das (im Gegensatz zur zentralen Nervenfaser jede einzelne periphere Nervenfaser umgebende) Bindegewebe eine strukturlose Hülle den Abschluß sichert. Diese Hülle darf mit den Gliagrenzhäuten im Zentralnervensystem verglichen werden.
Die Zytoplasmaansammlung um den platten Kern wird auch als Schwannsche Zelle bezeichnet; diese Zellen stehen aber untereinander in plasmodialem Zusammenhange.
In der markhaltigen peripheren Nervenfaser ist es wiederum das gliöse Gewebe, das durch seinen Markgehalt die kompliziertere Zusammensetzung der Hülle hervorruft. Man unterscheidet dann an der peripheren Nervenfaser 1. Neurilemm, 2. Markscheide; besser und einfacher wäre es, von einem markhaltigen Neurilemm zu sprechen. Der den Zellkern führende Zytoplasmarest der Hüllzelle liegt dem Myelin stets außen an. Der membranige Abschluß gegen das Bindegewebe ist ebenso ausgebildet wie bei der marklosen Faser.
Wenn man die markhaltigen, in der weißen Substanz des zentralen Nervensystems verlaufenden Nervenfasern als „markhaltig, aber ohne Neurilemm“ bezeichnet, so hat dies keine durchgreifende Bedeutung. Die zentrale Glia bildet offenbar nur deswegen keine geschlossenen Scheiden um jede Nervenfaser, weil im zentralen Nervensystem der Abschluß gegen das Bindegewebe durch die Gliagrenzhäute gebildet wird (s. S. 142).
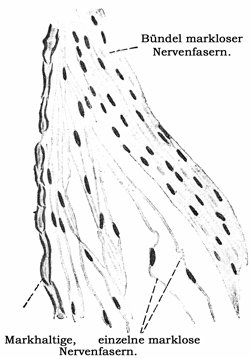
Fig. 93.
Zupfpräparat des N. sympath. vom Kaninchen. 280mal vergr. Technik Nr. 56, S. 149.
Der feinere Bau der markhaltigen Hülle erklärt sich aus der Entwicklung der Nervenfasern.
Nach der heute wohl allgemein angenommenen Ansicht entstehen die Nervenfasern durch Auswachsen aus den Nervenzellen; dieser Vorgang beginnt schon in sehr früher embryonaler Zeit, wo die relativ einfache Zusammensetzung des Embryonalkörpers und seine geringe Größe es bewirkt, daß auch die der Peripherie zustrebenden Nervenfasern den Weg zu den zu innervierenden Geweben leicht finden.
Mit den Neuriten wandern auch Gliabestandteile aus und werden zu den Hüllzellen der Nervenfasern. Aus ihnen bilden sich bei marklosen Nervenfasern das Neurilemm (Schwannsche Scheide), bei markhaltigen Nervenfasern ein markhaltiges Neurilemm dadurch, daß die Gliazellen in ihrem Zytoplasma, angeblich unter Mitwirkung von Plastosomen, Myelin bilden.
Jeder Bezirk der Hülle, zu dem ein Gliakern gehört, bildet einen, von den benachbarten Teilen der Nervenfaser deutlich abgegrenzten Abschnitt. Die Grenze wird durch die sogenannten Schnürringe (Ranvier) gebildet (Fig. 94, 95, 96); an diesen Stellen fehlt rings um den Achsenzylinder das Myelin, während die zytoplasmatische Gliasubstanz auch hier eine Grenze nach dem Bindegewebe bildet und gleichzeitig die Verbindung mit dem nächsten Segment herstellt. Wenn man auch die gliöse Hülle zwischen zwei Schnürringen als eine Einheit betrachten kann, so ist es doch wieder bemerkenswert, daß diese Einheiten nicht unabhängig voneinander sind, sondern in plasmodialem Zusammenhange stehen.
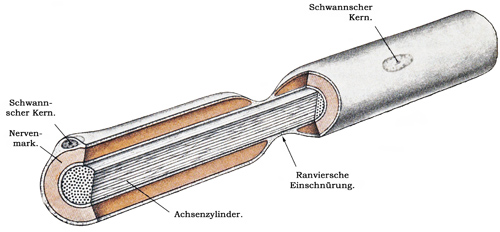
Fig. 94.
Stück einer markhaltigen Nervenfaser, schematisch. Lage der „Schwannschen Zelle“, des Myelins, Ranviersche Einschnürung.
Die zentrale Faser besitzt keine Ranvierschen Einschnürungen, doch sind auch hier Bildungen beschrieben worden, die denselben vielleicht analog sind (gliöse Schnürringe).
An den Stellen der Ranvierschen Einschnürungen dringt Silbernitrat besonders leicht in das Axoplasma ein und wird durch Reduktion zu metallischem Silber niedergeschlagen, wodurch sich kreuzförmige Figuren bilden (Fig. 95). Man nimmt an, daß auch Nahrungssubstanzen an diesen Stellen leichter eindringen können als in den markhaltigen Teilen der Nervenfaser.
Das Myelin steht in manchen Eigenschaften dem Fett nahe und wird deshalb zu den lipoiden Substanzen gerechnet. Durch seine starke Lichtbrechung erscheinen markhaltige Nervenfasern im frischen Präparate als vollkommen gleichartige, mattglänzende, zylindrische Fäden.
Das im Leben ganz homogene Mark erfährt im Absterben, auch beim Zusatz verschiedener Reagenzien, eine teilweise Umwandlung; anfangs wird die Nervenfaser doppelt konturiert, später gestaltet sich das Mark zu eigentümlich kuglig zusammengeballten Massen (Fig. 96, 10).
Entfernt man durch Reagenzien das Myelin aus der Nervenhülle, so bleibt häufig eine schwammartige Gerüstsubstanz in der Hülle zurück, die vorher nicht sichtbar war, das Neurokeratingerüst. Dieses wird von manchen Autoren als eine zytoplasmatische Stützsubstanz, von anderen als Kunstprodukt angesehen.
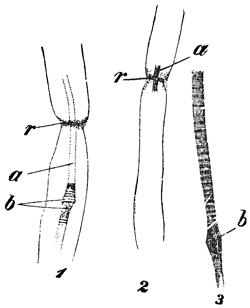
Fig. 95.
Markhaltige Nervenfaser des Frosches mit Höllensteinlösung behandelt. 560mal vergrößert. Technik Nr. 61, S. 150.
Sowohl an frischen als in bestimmter Weise fixierten markhaltigen Nervenfasern erkennt man, daß der Markmantel auch zwischen zwei Schnürringen nicht einheitlich ist, sondern in etwas unregelmäßigen Abschnitten durch schräge trichterartige Spalten (Lantermannsche Einkerbungen) in („zylindrokonische“) Segmente geteilt wird (Fig. 95). Diese Gebilde werden von vielen Autoren als Kunstprodukte betrachtet, die sehr rasch auch im frischen Präparate auftreten; es ist aber wichtig, darauf hinzuweisen, daß sie nur an peripheren nicht auch an zentralen markhaltigen Nervenfasern beobachtet werden.
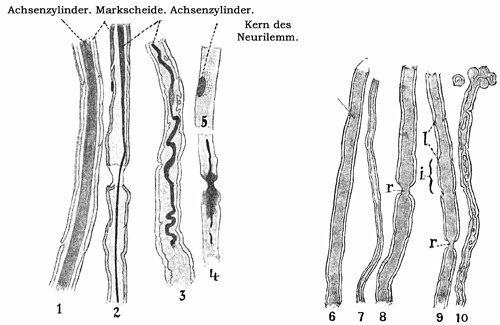
Fig. 96.
Markhaltige Nervenfasern aus dem N. ischiadicus des Frosches. 280mal vergr. 1. Normaler, 2. geschrumpfter, 3. geschlängelter Achsenzylinder. 4. Stelle eines Schnürringes. 5. Neurilemm mit Kern. Technik Nr. 54, S. 149. 6, 7, 8 und 9 frische Markscheiden, 10. durch Absterben veränderte Markscheide. r Schnürring, l Lantermannsche Einkerbungen, i zylindrokonisches Segment. Technik Nr. 57 u. 58, S. 149.
Offenbar derselbe Vorgang, dem wir bei der Entwicklung begegnet sind, wiederholt sich bei der Regeneration eines peripheren Nerven. Nur vom zentralen, d. h. mit der Nervenzelle zusammenhängenden Stumpf einer durchtrennten Nervenfaser kann ein neuer Achsenzylinder verwachsen. Im peripheren Stumpf geht der Achsenzylinder in seiner ganzen Länge zugrunde, die gliöse Hülle bleibt dagegen wie auch bei ähnlichen Vorgängen im Zentralorgan (s. S. 142) erhalten; die Schwannschen Zellen wuchern, beteiligen sich zuerst am Abbau der Zerfallsmassen und legen sich dann zu Zellbändern zusammen, in welche nun vom zentralen Stumpf aus der junge Achsenzylinder eindringt und in dieser Leitbahn bis zur Endaufsplitterung verwächst. Durch Aufnahme von Myelin bilden die Schwannschen Zellen endlich eine neue markhaltige Hülle.
Über die Bedeutung der Markbildung für die Funktion der Nervenfasern wissen wir wenig. In vielen Fällen ist beobachtet, daß bestimmte Nervenfasern erst funktionsreif werden, wenn die Hülle markhaltig wird (sogenannte Markreifung). Es darf angenommen werden, daß die Markbildung einen erhöhten Schutz für das reizleitende Zytoplasma gegen die Einwirkung reizauslösender Substanzen aus dem Säftestrom des Bindegewebes darstellt.
Über die Beziehungen der zentralen und peripheren Teile des Nervensystems zum Bindegewebe und zum Blutkreislauf s. bei Organe des Nervensystems.
Technik.
Nr. 50. Ganglienzellen, frisch. Man zerzupfe ein Stückchen des Ganglion Gasseri in einem Tropfen Kochsalzlösung und färbe unter dem Deckglas (S. 47) 2 Minuten mit Pikrokarmin. Die Fortsätze der Zellen reißen meist ab (Fig. 84, 3).
Ebenso kann man Ganglienzellen der Groß- und Kleinhirnrinde erhalten, nur gehen ebenfalls die Fortsätze leicht verloren.
Nr. 51. Multipolare Ganglienzellen des Rückenmarkes. Man befreie frisches Rückenmark mit der Schere so gut als möglich von der weißen Substanz und lege den grauen Rest in 1-2 cm langen Stücken in eine sehr verdünnte Chromsäurelösung (1 ccm der 0,5%igen Lösung [S. 5] zu 50 ccm destilliertes Wasser). Nach ca. 11/2-8 Tagen (die Zeit wechselt sehr je nach der äußeren Temperatur) ist das Rückenmark zu einer weißen Masse mazeriert, die mit einem Spatel vorsichtig auf 10-20 Stunden in 20 ccm neutrale Karminlösung[87] gebracht wird. Dann wird die Masse in ca. 50 ccm destilliertes Wasser übertragen, um einen Teil der Farbe auszuwaschen und nach ca. 5 Minuten in dünner Schicht auf einem trockenen Objektträger mit Nadeln ausgebreitet. Man kann jetzt schon bei einiger Übung die Ganglienzellen an ihren lebhaft rot gefärbten Kernen unterscheiden, vom Zellkörper und den Fortsätzen ist noch nichts zu sehen. Nun lasse man die Schicht vollständig trocknen und bedecke sie dann direkt mit einem Deckglase, an dessen Unterseite ein Tropfen Xylolbalsam aufgehängt ist (Fig. 84, 4).
Nr. 52. Nißl-Körper. Man fixiert Stücke von Gehirn oder Rückenmark in reichlich bemessenem 96%igem Alkohol (die Präparate auf Watte legen), den man am ersten Tage einmal, dann alle 2 Tage wechselt. Einbetten nach 4-5 Tagen in Zelloidin (s. S. 23).
Färbung: 1. Aq. dest.
2. 0,1%ige wässerige Toluidinblaulösung 1/2-1 Stunde,
3. Aq. dest. 15 Minuten.
4. Alk. 70%ig.
5. Alk. 96%ig, hier so lange differenzieren, bis keine Farbwolken mehr abgehen.
6. kurz Alk. absol.
7. Xylol.
Da ein längerer Aufenthalt in Xylol der Färbung schädlich ist, muß man möglichst schnell in Xylolbalsam (§ 10,3, S. 45) konservieren.
Nr. 53. Trophospongium-Kanälchen der Ganglienzellen. Spinalganglien der Katze fixiere man mit Sublimat-Pikrinsäure (S. 16). Die feinen Mikrotomschnitte werden mit Heidenhains Eisenhämatoxylin gefärbt (S. 40) und sind mit Immersionslinsen zu betrachten (Fig. 87).
Nr. 54. Zur Darstellung des „Apparato reticulare“ lege man kleine Objekte (zwei, drei Spinalganglien) von frisch getöteten Kaninchen oder Meerschweinchen in 3 ccm einer 2%igen Lösung von Osmiumsäure. Das ins Dunkle gestellte Glas muß öfter geschüttelt, die Flüssigkeit nach 4 Tagen gewechselt werden. Nach 8-12 Tagen werden die Stückchen gewässert (11, S. 17), schnell gehärtet (siehe S. 18) und mit dem Mikrotom in feine (5-7 µ dicke) Schnitte zerlegt. Suchen bei starker Vergrößerung (Fig. 88).
Nr. 55. Holzers Gliamethode, s. Zeitschrift für die ges. Neurol. und Psychiatrie Bd. LXIX. S. 354-363.
Nr. 56. Marklose Nervenfasern. N. vagus eines Kaninchens wird trocken (Nr. 57) zerzupft, dann mit einigen Tropfen einer 1/2%igen Osmiumlösung bedeckt; nach 5-10 Minuten sind die markhaltigen Nerven geschwärzt (man überzeuge sich davon bei schwacher Vergrößerung). Nun lasse man die Osmiumlösung ablaufen und bringe statt deren einige Tropfen destillierten Wassers darauf, das nach 5 Minuten durch neues Wasser ersetzt wird. Nach abermals 5 Minuten gieße man das Wasser ab, setze einige Tropfen Pikrokarmin auf das Präparat, bedecke es mit einem Deckglase und bringe es auf 24-48 Stunden in die feuchte Kammer; dann verdränge man das Pikrokarmin durch angesäuertes Glyzerin[88] (S. 48). Bei starker Vergrößerung sieht man die markhaltigen Nerven blauschwarz, die marklosen sind blaßgrau, fein längsgestreift. Noch zahlreichere marklose Nervenfasern liefert die gleiche Behandlung des Sympathikus. Nur ist dieser Nerv etwas schwerer aufzufinden. Es empfiehlt sich, das große Zungenbeinhorn, sowie den Nerv. hypoglossus zu durchschneiden und auf die andere Seite zu drängen; hinter dem N. vagus findet man den Sympathikus, der an seinem 3-4 mm großen länglichovalen, gelblich durchscheinenden Ganglion cervicale supremum erkennbar ist. Zerzupft man das dicht unter dem Ganglion befindliche Stück, so erhält man die meist zweikernigen Ganglienzellen; es ist sehr schwer, letztere so zu isolieren, daß die von ihnen ausgehenden Fortsätze deutlich sichtbar werden.
Nr. 57. Frische markhaltige Nervenfasern. Man lege den N. ischiadicus eines eben getöteten Frosches bloß, schneide denselben unten in der Kniekehle und ca. 1 cm höher oben mit einer feinen Schere durch und zerzupfe auf dem trockenen Objektträger ohne Zusatz, bei „halber Eintrocknung“. Indem man am unteren Ende des Nerven die Nadel ansetzt, spannt sich beim Auseinanderziehen ein glänzendes Häutchen zwischen den etwa zur Hälfte der Länge auseinandergezogenen Nervenbündeln, das nun mit einem Tropfen Kochsalzlösung oder mit Osmiumlösung nach Technik Nr. 56 und einem Deckglase bedeckt wird. Das Häutchen enthält zahlreiche, genügend isolierte Nervenfasern. Die Manipulation muß sehr schnell (in ca. 15 Sekunden) vorgenommen werden, damit die Nervenfasern nicht eintrocknen. Man halte sich nicht mit dem Isolieren in einzelne Bündel auf. Resultat Fig. 95, 6, 7, 8, 9.
Nr. 58. Veränderungen der Markscheide. Man lasse zu Präparat Nr. 57 einen Tropfen Wasser vom Rande des Deckglases zufließen. Schon nach einer Minute tritt die Bildung der Marktropfen ein (Fig. 95, 10).
Nr. 59. Achsenzylinder. Trocken zerzupfen (wie Nr. 57) und — ohne Benutzung des Wärmeschrankes — färben mit Methylenblau (S. 36); zuerst färben sich die Schnürringe, die oft so dunkel werden, daß man den Achsenzylinder dort nicht erkennen kann (Fig. 95, 4). Viele Achsenzylinder schrumpfen rasch und verschieben sich in der Markscheide (2), andere ziehen sich zu stark geschlängelten Bändern zusammen (3).
Nr. 60. Darstellung der Achsenzylinder mit karminsaurem Natron. Man lege den Nervus ischiadicus eines frisch getöteten Kaninchens, ohne ihn zu berühren, bloß; dann wird ein Streichhölzchen parallel der Längsachse unter den Nerven geschoben, der Nerv vermittels Ligaturen an das obere und untere Ende des Stäbchens befestigt; dann erst wird der Nerv jenseits der Ligaturen durchschnitten und endlich mit dem Hölzchen eingelegt
a) in 100 ccm Müllersche Flüssigkeit (s. S. 15) dann werden die Ligaturen durchschnitten, ein 0,5-1 cm langes Stückchen abgeschnitten und in feine Bündel (nicht in Fasern) zerzupft. Die Bündel kommen 4 Wochen,
b) direkt in karminsaures Natron (S. 9) 4-5 Tage,
werden dann
c) in 80%igem Alkohol abgespült 5 Minuten,
dann
d) in absolutem Alkohol gehärtet (S. 17). Dann werden die Bündel in Karbolxylol fein zerzupft und in Xylolbalsam konserviert.
Die Schnürringe sind nicht so deutlich wie am frischen und am Osmiumpräparat, sondern nur als feine Querlinien zu erkennen. Die etwas geschrumpften Achsenzylinder und die Kerne sind schön rot gefärbt. Nicht selten verschiebt sich der Achsenzylinder, so daß die bikonische Anschwellung nicht mehr am Schnürringe, sondern darüber oder darunter liegt.
Nr. 61. Schnürring, Achsenzylinder. Vorbereitung: 10 ccm der 1%igen Lösung von Argent. nitr. sind zu 20 ccm destilliertem Wasser zu gießen. Nun töte man einen Frosch, eröffne durch einen Kreuzschnitt die Bauchhöhle, präpariere sämtliche Eingeweide heraus, so daß die an der Seite der Wirbelsäule herabsteigenden Nerven sichtbar werden. Dann spüle man durch Aufgießen destillierten Wassers die Bauchhöhle aus und gieße, nachdem das Wasser abgelaufen ist, etwa 1/3 der Höllensteinlösung auf die Nerven. Nach 2 Minuten schneide man die feinen Nerven vorsichtig heraus und lege sie auf ca. 1/2 Stunde in den Rest der Höllensteinlösung. Ins Dunkle stellen! Dann übertrage man die Nerven in ca. 10 ccm destilliertes Wasser, wo sie 1-24 Stunden verweilen können. Betrachtet man alsdann den Nerven in einem Tropfen Wasser, so erkennt man bei schwacher Vergrößerung die aus platten Zellen bestehenden Häutchen (s. „zerebrospinale Nerven“) und zahlreiche Pigmentzellen; oft liegt noch ein Blutgefäß dem Nerven an. Nun zerzupfe man den Nerven, bedecke ihn dann mit einem Deckglase und setze an den Rand desselben einen kleinen Tropfen dünnen Glyzerins. Untersucht man bei starker Vergrößerung, so wird man im Anfang wenig von gefärbten Schnürringen und Achsenzylindern sehen, läßt man aber das Präparat einige Stunden im Tageslichte liegen (im Sonnenlichte nur wenige Minuten), so tritt die Schwärzung der genannten Teile ein. Dem Ungeübten wird es im Anfang schwer fallen, die bikonischen Anschwellungen, die durch das Zerzupfen oft weit vom Schnürringe vorgeschoben worden sind, zu erkennen; bei einiger Übung sieht man leicht Bilder, wie sie Fig. 96 zeigt.
V. Allgemeine Bemerkungen über Zellverbindungen.
Alle Gewebe bestehen aus Formbestandteilen, in denen wir Zytoplasma, Zellkerne und Bildungsprodukte dieser Grundbestandteile aller lebenden Materie wiederfinden. Man hat deshalb den Organismus der Metazoen als einen Zellenstaat aufgefaßt, die Zelle als den Baustein bezeichnet, der in unendlicher Variation im Aufbau aller Teile wiederkehrt und in genetischer wie funktioneller Beziehung die Einheit darstellt, auf der sich alles Leben aufbaut.
Diese Auffassung muß damit rechnen, daß in der Mehrzahl der Fälle eine scharfe Begrenzung einzelner Zellen in den Bestandteilen des Organismus nicht durchgeführt werden kann. Wohl gibt es sogenannte freie Zellen (s. besonders das Blut), aber die Mehrzahl der Zellen steht durch feinere Fortsätze mit benachbarten in Verbindung; nur die gewöhnlichen Methoden, deren wir uns bedienen, lassen oft solche Verbindungen nicht deutlich hervortreten, so daß wir einen Zellkern mit einem ihn umgebenden Zytoplasma als abgeschlossene Zelle ansehen auch dann, wenn das Zytoplasma in Wirklichkeit durch eine Reihe von Strängen mit benachbarten „Zellen“ in Verbindung steht.
Wenn wir von einer Zusammensetzung der Gewebe aus Zellen sprechen, so setzen wir dabei voraus, daß diese Zellen nicht räumlich voneinander vollständig getrennte oder gar funktionell voneinander unabhängige Gebilde sind. Es gehört vielmehr zur Bildung eines Gewebes, wie wir heute wissen, gerade der Zusammenhang der Zellen untereinander, der nur in bestimmten Fällen verloren geht.
Oft wird als die hauptsächliche Bedingung für den Zusammenhalt der Zellen zu Geweben die Ausbildung von „Kittsubstanzen“, also Interzellularsubstanzen betrachtet. Das ist aber offenbar gerade bei denjenigen Geweben, bei denen Zellen sehr dicht aneinandergeschlossen sind, nicht der Fall. Hier, bei den Epithelien, werden die Zellen durch feine Fortsätze aneinandergehalten, während wir die vermeintliche Kittsubstanz als Spalten auffassen, in denen sich der zur Ernährung der Zellen notwendige Gewebssaft bewegt.
Anders liegen in dieser Hinsicht die Dinge bei den sogenannten Stützgeweben, wo Interzellularsubstanzen in verschiedenem Grade für die Konsistenz des ganzen Gewebes charakteristisch sind. Auch hier ist aber die Interzellularsubstanz nicht ein die zugehörigen Zellen verbindender Kitt, sondern zum Teil völlig unabhängig von den Zellen, eine für den Gesamtorganismus wichtige neue Bildung.
Demgemäß legen wir auf die zytoplasmatischen Zusammenhänge zwischen den Zellen großen Wert, zumal wir von allen Geweben als Ausgangszustand den Zellenverband kennen. Primär miteinander in Verbindung stehende Zellen bilden ein Plasmodium[89]; dieser Zusammenhang ist von der ersten Entwicklung aus der Eizelle her ableitbar; dabei können im einzelnen die größten Unterschiede im Aussehen eines Plasmodiums vorkommen. Bleibt nach einer Kernteilung die Zytoplasmateilung aus, so entstehen große, vielkernige Zytoplasmagebilde (quergestreifte Muskelfasern); findet eine Zytoplasmateilung statt, bleibt sie jedoch unvollständig, so daß es zur Bildung von kürzeren oder längeren Verbindungsfäden kommt, so haben wir den häufigsten Fall plasmodialer Zusammenhänge.
Um den Formverschiedenheiten plasmodialer Gewebe gerecht zu werden, könnte man die Weite der die Plasmodien durchsetzenden Saftspalten zu einer Untereinteilung verwenden und unterscheiden: 1. Spaltenlose Plasmodien (Muskelfasern), 2. feinspaltige Plasmodien (Epithel), 3. weitmaschige oder Schwammplasmodien (Stützgewebe, Glia, Nervengewebe [?]).
Der Gegensatz zu dem Begriff Plasmodium ist die freie Zelle, die nach unserer Auffassung im Metazoenkörper ein sekundär erworbener Zustand ist. Freie Zellen haben die Fähigkeit, sich in den flüssigen Gewebesäften fortzubewegen. Am deutlichsten sind sie im Blute ausgebildet. Alle freien Zellen haben sich sekundär aus Plasmodien losgelöst.
Eine Loslösung einzelner Zellen kommt unter besonderen Reizen auch dann vor, wenn wir im Normalzustand eines Gewebes nur den plasmodialen Verband seiner Zellen finden. Solche Vorgänge kennen wir z. B. vom Stützgewebe und der Glia im Nervensystem. Auch die Abstoßung verbrauchter Epithelzellen, die dann durch neue ersetzt werden, gehört hierher.
Freie Zellen können nach ihrer Loslösung entweder noch wichtige Aufgaben erfüllen, wie wir das besonders vom Blute her kennen, oder sie gehen rasch nach ihrer Ablösung aus dem plasmodialen Verbande zugrunde.
In einer Reihe von Geweben ist der Nachweis erbracht, daß die Zellen in der Regel zu einem Plasmodium verbunden sind; so im Epithelgewebe, unter den Stützgeweben beim embryonalen, gallertigen, retikulären Bindegewebe und dem Knochengewebe, während dieser Nachweis für das lockere Bindegewebe, sowie für das Sehnengewebe noch aussteht. Ebenso ist es zweifelhaft, ob die glatten Muskelzellen plasmodial verbunden sind, während ein solcher Zusammenhang für das Herzmuskel- und in bestimmter Weise auch für das Skelettmuskelgewebe unzweifelhaft ist. Das Gliagewebe ist ein typisches Plasmodium, für das Nervengewebe ist der plasmodiale Verband wahrscheinlich.
Die in den meisten Geweben durchgeführte Einteilung in Zellen ist also unvollständig und nicht in dem Sinne zu verstehen, daß dadurch vollständig selbständige Einzelindividuen geschaffen werden. Es erscheint vielmehr berechtigt, anzunehmen, daß der mit den Lebensvorgängen einhergehende Stoffwechsel eine Oberflächenvergrößerung notwendig macht; diese ist in der vielfältigen Einteilung zytoplasmatischer Massen gegeben. Jeder Zellkern bildet dann mit dem ihn umgebenden Zytoplasma ein Stoffwechselzentrum, das von Gewebssaft reichlich umspült ist.
Hierbei erklärt es sich auch, daß oft zwei- und mehrkernige „Zellen“ vorkommen. Gewöhnlich steht die Größe der vorhandenen Kernsubstanz und die zugehörige Zytoplasmamenge in einem bestimmten Verhältnis zueinander (Kern-Plasma-Relation). Die Zelle spielt also weniger die Rolle einer selbständigen Lebenseinheit, eines Bauelementes, als daß sie einem Kernbereich der die Gewebe aufbauenden zytoplasmatischen Substanz entspricht.
Unter den verschiedensten Umständen können die Grenzen zwischen vorher getrennten (wenn auch plasmodial verbundenen) Zellen sekundär verschwinden; dann werden eine größere Reihe von vorher abgetrennten Kernbereichen zu größeren Zytoplasmaklumpen vereinigt, in denen dann zahlreiche Kerne darin liegen. Solche Bildungen bezeichnen wir als Synzytium. Diese sind also gegenüber Plasmodien nur dadurch zu unterscheiden, daß ihnen eine Stufe vorausging, in der die einzelnen Kernbereiche als selbständige Stoffwechselzentra anzusehen waren.
Als Synzytien in diesem Sinne bezeichnen wir z. B. die Osteoklasten (siehe Knochenentwicklung), das Synzytium des Trophoblastes in der Plazenta, ferner zahlreiche besonders unter pathologischen Bedingungen auftretende Bildungen.
Welches die Ursachen für die Bildung von Synzytien sind, übersehen wir nicht.
Die ursprüngliche, genetische Zusammengehörigkeit der verschiedenen Gewebearten kommt vielfach in der innigen Verbindung zum Ausdruck, in der auch im ausgebildeten Zustande die Bestandteile verschiedener Gewebe miteinander stehen. Teils sind es Interzellularsubstanzen, teils zytoplasmatische Zusammenhänge, die den Zusammenhalt gewährleisten.
Zwei Beispiele: Im System des Bewegungsapparates stehen folgende Gewebearten in untrennbar fester Verbindung miteinander: die Muskelfaser mit der Sehne, diese durch das Bindegewebe des Periostes mit dem Knochen; die Muskelfaser steht endlich mit der Endigung des sie innervierenden Nerven in inniger Verbindung.
Viele Epithelzellen stehen zwar nur durch interzellulare Bildungen mit dem Bindegewebe in Verbindung, bei anderen sind aber plasmodiale Verbindungen mit Bindegewebszellen nachgewiesen.
Die innige Verbindung der einzelnen Gewebe untereinander, das Charakteristische der hierdurch ermöglichten Leistungen ist bei der Besprechung der einzelnen Gewebearten schon teilweise betont worden, zum Teil kommt es bei der Schilderung der Organzusammensetzung zum Ausdruck.
Definitionen und Winke zur Erkennung von Geweben.
Die nachfolgenden, den Bedürfnissen des Anfängers dienenden Sätze sollen die Diagnose in Schnittpräparaten erleichtern, die nach einer der üblichen Methoden (Kern- und einfache Zytoplasmafärbung) gefärbt sind.
I. Epithelgewebe: Lage an einer freien Oberfläche, basale Begrenzung durch Bindegewebe, relativer Kernreichtum.
Drüsengewebe: Zytoplasmareiche, zu Kugeln, Röhren, Strängen oder Säcken mit oder ohne Lumen angeordnete Epithelien. Bindegewebe spärlich, aber gefäßreich.
II. Stützgewebe: Bedeutung der Interzellularsubstanz neben den Zellen.
a) Embryonales Bindegewebe: Weitmaschiges Plasmodium, weiche strukturlose Interzellularsubstanz.
b) Gallertgewebe: Weitmaschiges Plasmodium, gallertige Interzellularsubstanz mit kollagenen Fibrillenbündeln.
c) Retikuläres Gewebe: Plasmodial verbundene Zellen mit eingelagerten Stützfibrillen; dazwischen Hohlräume, die mit freien Zellen (meist Lymphozyten) angefüllt sind.
d) Lockeres Bindegewebe: Außer den (plasmodial verbundenen) Fibroblasten freie Zellen (ruhende Wanderzellen, Plasmazellen, Mastzellen, Leukozyten), reichliche kollagene Fibrillenbündel, elastische Fasern.
e) Fettgewebe: Lockeres Bindegewebe mit eingelagerten Fettzellen (die letzteren als inhaltlose Blasen mit wandständigen Kernen in allen in Kanadabalsam eingebetteten Präparaten).
f) Pigmentgewebe: Bindegewebe mit eingelagerten plasmodial verbundenen Pigmentzellen.
g) Sehnengewebe: Streng parallel geordnete Bindegewebsfibrillenbündel, dazwischen zu Längsreihen gestellt die Sehnenzellen mit ihren spindeligen Kernen.
h) Knorpelgewebe: Zellen im Innern der scharf begrenzten Knorpelhöhlen oval bis rundlich; Interzellularsubstanz hyalin oder mit fibrillärer Einlagerung (kollagene oder elastische Fasern); auch in dickeren Lagen gefäßfrei; Angrenzung an Gelenkhöhlen, an Bindegewebe (Perichondrium) oder an Knochen.
i) Knochengewebe: Zellen im Innern der scharf begrenzten Knochenhöhlen, meist abgeplattet linsenförmig mit zahlreichen Fortsätzen untereinander verbunden; Interzellularsubstanz lamellär geschichtet, in dickeren Lagen von Blutgefäßen durchzogen. Angrenzung stets an Bindegewebe (Periost).
III. Muskelgewebe: Vorwiegen des Zytoplasmas, Interzellularsubstanzen spielen keine Rolle.
a) Glatte Muskelzellen: Spindelige Form, länglicher Kern in der Mitte der Zellenlänge (beachte Querschnitt!), Zytoplasma schwach fibrillär differenziert; einzeln oder zu Lagen oder Bündeln geordnet.
b) Herzmuskelgewebe: Plasmodiale Zusammenschließung zu Fasern mit seitlichen Verbindungen; auf dem Querschnitt je ein Kern in der Fasermitte; deutliche fibrilläre Differenzierung des Zytoplasmas, Querstreifung.
c) Skelettmuskelgewebe: Jede Muskelfaser ist ein in sich abgeschlossenes Plasmodium mit sehr vielen, meist wandständigen Kernen; Bildung des Sarkolemms, extrem starke Fibrillenbildung im Zytoplasma, sehr prägnante Querstreifung.
IV. Nervengewebe: In Zentralorganen: Nervenzellen mit wechselnder Gestalt (Fortsätze!), eventuell Nißl-Körper, großer chromatinarmer Kern mit einem Nukleolus; Nervenfasern mit und ohne Markscheide; Gliaplasmodium mit kleineren, chromatinreicheren Kernen; Bindegewebe nur in unmittelbarer Umgebung der Blutgefäße.
Peripher: Nervenzellen stets umgeben von Kapsel- (Glia-) Zellen, einzeln oder zu Ganglien vereinigt; Nervenfasern einzeln oder (durch Bindegewebe) zu Bündeln zusammengeschlossen; Achsenzylinder und markloses oder markhaltiges Neurilemm (Kern des Neurilemms stets an der Peripherie der Faser).
Zur Diagnostik der Gewebe in einem Schnitte benutze man starke Systeme, um sich von der Lage des Zellkernes im Zytoplasma, von der Abtrennung des Zytoplasmas von Interzellularsubstanzen, von fibrillären Strukturen und deren Lagebeziehung zum Zytoplasma usw. zu überzeugen.
Die Diagnose des Organes dagegen geschieht am besten mit schwachen Systemen, damit die Übersicht über die charakteristische Zusammenordnung der Gewebe gewonnen werden kann.
In vielen Fällen entstehen diagnostische Irrtümer durch Nichtbeachtung der relativen Größe der Gewebestrukturen. In Fig. 97 sind eine Reihe von verschiedenen Bauelementen des menschlichen Körpers bei gleicher (ca. 250facher) Vergrößerung zusammengestellt.
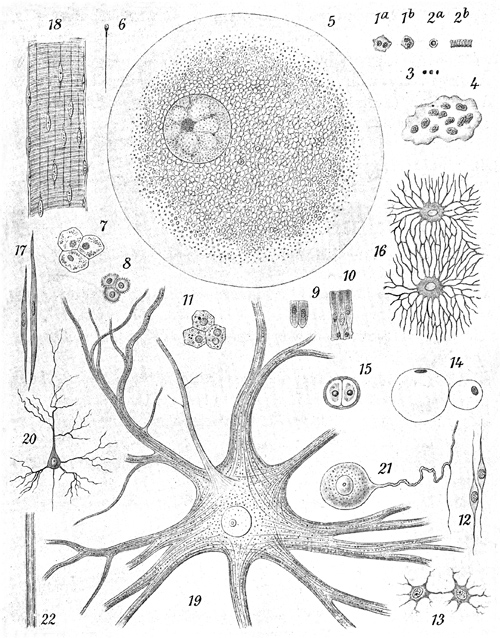
Fig. 97.
Übersichtliche Zusammenstellung einiger Zellformen und Zellgrößen beim Menschen im gleichen Maßstabe von 250 : 1 (halbschematisch) (aus Gegenbaur-Fuerbringer, Anatomie des Menschen).
1a, 1b Leukozyten; 2 rote Blutkörperchen (Erythrozyten), a von der Fläche, b von der Kante (im optischen Querschnitt), zu acht zusammenklebend; 3 Blutplättchen. — 4 Riesenzelle (unnatürlich schematisiert). — 5 Eizelle; 6 Samenfaden (Spermium). — 7 Plattenepithel; 8 polyedrisches Epithel mit Interzellularbrücken; 9, 10 kürzere und längere zylindrische Epithelzellen (10 mit Ersatzzellen); 11 Leberzellen. — 12 Spindelzellen (Gallertgewebe); 13 Retikulumzellen; 14 Fettzellen; 15 Knorpelzellen; 16 Knochenzellen. — 17 Glatte Muskelzellen; 18 Kurzes Stück einer quergestreiften Muskelfaser. — 19 Große motorische Ganglienzelle aus der Lendenschwellung des Rückenmarkes; 20 kleine Pyramidenzelle aus der Großhirnrinde; 21 sympathische Ganglienzelle; 22 kurzes Stück einer markhaltigen Nervenfaser.
Die faserigen Strukturen des Körpers bieten der Erkennung oft Schwierigkeiten. Zuerst suche man festzustellen, ob die faserigen Strukturen zytoplasmatisch sind, d. h. Zellenbau (Zytoplasma, Zellkerne) besitzen, oder ob sie außerhalb von Zellen liegen. Im letzteren Falle kann die Diagnose nur zwischen bindegewebigen (lockeres Bindegewebe, elastisches Bindegewebe, Sehnengewebe) und Nervenfasern schwanken; die letzteren erkennt man, wenn sie markhaltig sind, an der konzentrischen Anordnung von markhaltiger Hülle und Achsenzylinder, denen außen die Kerne des Neurilemms anliegen; marklose Nervenfasern sind in nicht ganz einwandfrei fixierten Präparaten zunächst nicht leicht von Bindegewebe zu unterscheiden; der parallelfaserige Bau, die im Gegensatz zum parallelfaserigen Bindegewebe relativ lockere Anordnung der meist wellig verlaufenden Achsenzylinder, der relative Reichtum an länglichen Zellkernen ermöglichen trotzdem die Erkennung. Liegen die Kerne innerhalb der Fasern, so gehören die Strukturen zu den zytoplasmatischen Geweben; es kann nur glatte, Herz- oder Skelettmuskulatur in Frage kommen; man beachte bezüglich der glatten Muskulatur, deren Unterscheidung von Bindegewebsbündeln dem Anfänger erfahrungsgemäß Schwierigkeiten bereitet, daß auf Querschnitten nicht in jeder Muskelzelle ein Zellkern getroffen sein kann, da der Zellkern nur im mittleren, gleichzeitig dicksten Teil der zugespitzten Fasern liegt. Sorgfältige Betrachtung des Präparates schützt hier vor Fehldiagnosen.