ZWEITES CAPITEL. Die chemisch-physikalischen und morphologischen Eigenschaften der Zelle.
Reading edition
Die Zelle ist ein Organismus und als solcher kein einfaches, sondern ein aus vielen, verschiedenartigen Theilen zusammengesetztes Gebilde. Die wahre Natur aller dieser Theile, welche sich augenblicklich noch grösstentheils unserer Kenntniss entziehen, genauer festzustellen, wird noch für lange Zeit eine Aufgabe biologischer Forschungen bleiben. Wir stehen jetzt in unserem Verständniss dem Zell-Organismus in ähnlicher Weise gegenüber, wie vor hundert Jahren die Naturforscher dem thierischen und pflanzlichen Gesammtorganismus vor der Entdeckung der Zellentheorie. Um in das Geheimniss des Zellorganismus noch tiefer einzudringen, müssen die optischen Hülfsmittel, noch mehr aber und vor allen Dingen die chemischen Untersuchungsmethoden auf eine höhere Stufe der Vollendung, als sie zur Zeit besitzen, gebracht werden. Es scheint mir zweckmässig, diese Gedanken gleich hier hervorzuheben, damit sie der Leser bei der folgenden Darstellung immer vor Augen hat.
In jeder Zelle ist ausnahmslos ein besonders geformter Theil nachzuweisen, welcher im ganzen Organismenreich mit einer grossen Gleichförmigkeit auftritt, der Zellenkern. Ihm und dem übrigen Theil der Zelle, dem Protoplasma, kommen offenbar eigenartige Aufgaben im Lebensprocess des Elementarorganismus zu. Daher lässt sich die Untersuchung der chemisch-physikalischen und morphologischen Eigenschaften der Zelle am besten in zwei Theile zerlegen: in die Untersuchung des Protoplasmakörpers und in die Untersuchung des Zellkerns.
Daran schliessen sich als Anhang noch 3 kleinere Abschnitte an. Von diesen handelt der erste über die Frage: Giebt es kernlose Elementarorganismen? Der zweite beschäftigt sich mit den Pol- oder Centralkörperchen, welche als besondere Zellorgane neben dem Kern zuweilen im Protoplasma aufgefunden werden; in dem dritten wird ein kurzer Abriss von der Nägeli’schen Theorie der Molecularstructur organisirter Körper gegeben werden.
I. Die chemisch-physikalischen und morphologischen Eigenschaften des Protoplasmakörpers.
Bei Pflanzen und Thieren sehen die Zellen zuweilen nach Form und Inhalt so ausserordentlich verschieden aus, dass sie auf den ersten Blick überhaupt nichts Gemeinsames und Vergleichbares darzubieten scheinen. Man vergleiche die Substanz einer Pflanzenzelle am Vegetationskegel mit einer von Stärkekörnern erfüllten Zelle der Kartoffelknolle, oder den Inhalt einer Embryonalzelle einer Keimscheibe mit dem Inhalt einer Fettzelle oder eines mit Dotterplättchen angefüllten Amphibieneies. Der unbefangene Beobachter wird nur Gegensätze erblicken. Trotzdem stimmen alle diese so ungemein verschiedenen Zellen bei tieferer Untersuchung in einem Punkte überein: in dem Besitz eines sehr wichtigen, eigenthümlichen Stoffgemenges, das dort in grösserer Masse, hier nur in Spuren vorhanden ist, in keinem Elementarorganismus aber vollständig vermisst wird. Dieses Stoffgemenge lässt in vielen Fällen die wunderbaren Lebensphänomene erkennen, von denen später gehandelt wird, die Eigenschaft der Contractilität, der Reizbarkeit etc., und da dasselbe ausserdem bei jugendlichen Zellen, bei niederen Organismen, bei den Zellen des Vegetationskegels und der Keimscheibe, allein den Zellkörper — vom Kern natürlich abgesehen — ausmacht, hat man in ihm den hauptsächlichen Träger der Lebensfunctionen erblickt. Es ist das Protoplasma oder die bildende Substanz (forming matter) des englischen Histologen Beale (I. 3).
a) Begriff des Protoplasmas und Berechtigung desselben.
Um zu wissen, was Protoplasma ist, wird man am besten dasselbe an solchen Zellen untersuchen, in denen es möglichst frei von anderen Beimischungen und in grösserer Menge auftritt, und am besten an den Objecten, an denen sich die Begründer der Protoplasmatheorie ihre Vorstellung von der Natur desselben gebildet haben. Solche Objecte sind junge Pflanzenzellen, Amöben, Rhizopoden, die Lymphkörperchen von Wirbelthieren. Wer hier die charakteristischen Eigenschaften des Protoplasma erkannt hat, wird dasselbe auch in solchen Zellkörpern auffinden, in denen es nur in geringer Menge vorhanden und durch andere Substanzen mehr oder minder verdeckt ist.
Es ist der Vorschlag gemacht worden (II. 10), den Begriff Protoplasma, mit dem ein unberechtigter Cultus getrieben werde, überhaupt ganz fallen zu lassen; denn die Verwendung dieses Wortes sei heutzutage eine so unbestimmte und schrankenlose geworden, dass man sich mit Recht fragen könne, ob durch seinen jetzigen Gebrauch wirklich Nutzen und nicht viel mehr Verwirrung gestiftet werde.
Dieser Vorschlag kann weder als ein zweckdienlicher, noch als ein in der Sache berechtigter bezeichnet werden. Denn wenn auch zugegeben werden mag, dass von mancher Seite das Wort in verkehrter Weise gebraucht wird, dass es auch nicht möglich ist, in einem kurzen Satze eine erschöpfende Definition des Wortes Protoplasma zu geben, und dass man in manchen Fällen in Verlegenheit kommt, zu sagen, welcher Theil in einer Zelle Protoplasma ist und welcher nicht, so geht aus alle dem die Entbehrlichkeit des Protoplasmabegriffes noch in keiner Weise hervor. Aehnliche Bedenken können auch gegen manche andere Worte erhoben werden, durch welche wir uns über bestimmte Stoffgemenge der Organismen zu verständigen suchen. Mit dem Wort Nuclein oder Chromatin bezeichnen wir z. B. einen gewissen Bestandtheil des Kerns, der für Manchen leidlich gut bestimmbar erscheinen wird. Und doch wird der Mikroskopiker zugeben müssen, dass es im ruhenden Kerngerüst nicht möglich ist, genau zu bestimmen, was Linin und was Nuclein ist, oder zu entscheiden, ob man im einen Fall nicht zu viel, im anderen Fall zu wenig mit gefärbt hat.
Ebenso wenig wie das Wort Nuclein, ist das Wort Protoplasma entbehrlich, um sich über die Zellbestandtheile zu verständigen. Nur soll man nicht den Anspruch erheben, dass mit dem Wort Protoplasma ein chemisch scharf definirbarer Körper bezeichnet sei.
Protoplasma ist ein morphologischer Begriff (und dasselbe gilt mehr oder minder auch für das Wort Nuclein und so viele andere); es ist eine Bezeichnung für ein Stoffgemenge, das einer Anzahl physikalischer, chemischer und biologischer Eigenschaften zeigt. Solche Begriffe sind bei dem gegenwärtigen Stand unserer Wissenschaft unentbehrlich. Wer mit der Geschichte der Zelle bekannt ist, weiss, welche Summe von Beobachtung und wie viel logische Denkarbeit vieler Forscher nothwendig gewesen ist, um den Begriff Protoplasma zu entwickeln, der weiss, dass mit der Schaffung dieses Begriffes die ganze Zellen- und Gewebelehre einen viel tieferen Inhalt gewonnen hat. Wie viele Kämpfe hat es gefordert, bis festgestellt wurde, dass an der Zelle nicht die Membran, sondern der Inhalt das Wesentliche ist, und dass in dem Inhalte wieder eine besondere, überall wiederkehrende Substanz ist, die in ganz anderer Weise als der Zellsaft, die Stärkekörner und Fetttropfen am Lebensprozess betheiligt ist.
Das Wort Protoplasma hat daher nicht nur seine historische, sondern auch seine wissenschaftliche Berechtigung, und so wollen wir denn näher zu bestimmen suchen, was darunter zu verstehen ist.
b) Allgemeine Charakteristik des Protoplasmas.
Das Protoplasma einzelliger Organismen, pflanzlicher und thierischer Zellen (Fig. 1 und 2) erscheint als eine zähflüssige, fast immer farblose, mit Wasser nicht mischbare Substanz, die in Folge einer gewissen Aehnlichkeit mit schleimigen Stoffen von Schleiden als Schleim der Zelle bezeichnet wurde. Sie bricht das Licht stärker als Wasser, so dass selbst feinste Protoplasmafädchen sich trotz ihrer Farblosigkeit in diesem Medium erkennen lassen. In keinem Protoplasma fehlen kleinste, nur wie Punkte erscheinende Körnchen, die Mikrosomen, die bald spärlicher, bald reichlicher vorhanden und in eine bei schwächerer Vergrösserung homogen aussehende Grundsubstanz eingebettet sind. Je nach der Menge der Mikrosomen sieht daher das Protoplasma bald mehr durchscheinend, hyalin, bald etwas dunkler und körnig aus.
Die Vertheilung der Körnchen im Zellenleib ist selten eine gleichmässige. Gewöhnlich bleibt eine mehr oder minder feine, oberflächliche Schicht körnchenfrei. Da dieselbe ausserdem noch einen etwas festeren Aggregatzustand als die von ihr eingeschlossene, wasserreichere und körnige Protoplasmamasse darbietet, hat man beide als zwei verschiedene Plasmaarten unterschieden und die eine als Hautplasma oder Hyaloplasma und die andere als Körnerplasma bezeichnet (Fig. 2 ek. en.).
Manche Forscher, wie namentlich Pfeffer, de Vries etc. sind geneigt, in der Hautschicht ein besonders differenzirtes und mit besonderen Functionen betrautes Organ des Zellkörpers zu erblicken. Zu Gunsten einer derartigen Auffassung liess sich wohl das folgende von mir angestellte Experiment verwerthen:
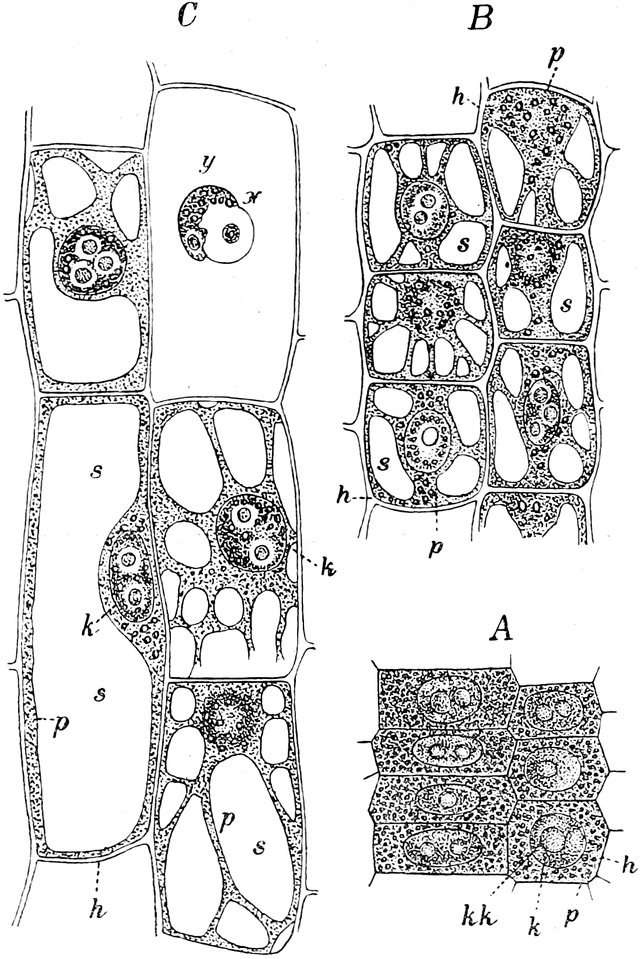
Fig. 1. Parenchymzellen aus der mittleren Schicht der Wurzelrinde von Fritillaria imperialis; Längsschnitte, nach 550maliger Vergrösserung.
Nach S
ACHS
(
II. 33
) Fig. 75.
A
dicht über der Wurzelspitze liegende, sehr junge Zellen, noch ohne Zellsaft;
B
die gleichnamigen Zellen etwa 2 Millimeter über der Wurzelspitze, der Zellsaft
s
bildet im Protoplasma
p
einzelne Tropfen, zwischen denen Protoplasmawände liegen;
C
die gleichnamigen Zellen etwa 7–8 Millimeter über der Wurzelspitze; die beiden Zellen rechts unten sind von der Vorderfläche gesehen, die grosse Zelle links unten im optischen Durchschnitt gesehen; die Zelle rechts oben durch den Schnitt geöffnet; der Zellkern lässt unter dem Einfluss des eindringenden Wassers eine eigenthümliche Quellungserscheinung wahrnehmen (
x
y
).
k
Kern.
kk
Kernkörper.
h
Membran.
Reife, in den Eileiter eingetretene und mit einer Gallerthülle umgebene Eier von Rana temporaria wurden mit der äusserst feinen Spitze einer Glasnadel vorsichtig angestochen. Die so hervorgerufene Verletzung war nach der Operation äusserlich nicht wahrnehmbar. Ein Austritt von Dottersubstanz war an der Stichstelle nicht zu bemerken. Als aber darauf die Eier befruchtet wurden, so begann nach einiger Zeit an allen verletzten Eiern Dottersubstanz in ziemlich beträchtlicher Menge an der Oberfläche hervorzuquellen und zwischen Ei- und Dotterhaut einen mehr oder minder grossen Höcker (Extraovat. Roux) zu bilden. Durch den Akt der Befruchtung wurde der Substanzaustritt erst hervorgerufen, weil durch das Eindringen des Samenfadens die Eirinde gereizt und, wie an geeigneten Objecten leicht zu beobachten ist, zu einer energischen Contraction angeregt wird. Durch den Stich muss mithin in der Hautschicht der Zelle eine Wunde entstanden sein, welche bis zur Befruchtung noch nicht hatte ausheilen können und erst in Folge der durch die Befruchtung bedingten Contraction Dotter ausfliessen liess. Da nun zwischen der Verletzung und dem Eindringen des befruchtenden Samenfadens bei den Froscheiern immer ein längeres, von mir nicht genauer bestimmtes Zeitintervall liegt, so dürfte dies wohl dafür sprechen, dass der Hautschicht in der That eine besondere, von dem darunter gelegenen Zellinhalt etwas verschiedene Structur und besondere Eigenschaften zukommen.
c) Chemische Zusammensetzung des Protoplasmas.
Ausserordentlich unbefriedigend sind unsere Kenntnisse von der chemischen Natur des Protoplasma. Man hat zuweilen dasselbe als einen Eiweisskörper oder geradezu als „lebendes Eiweiss“ bezeichnet. Durch solche Ausdrucksweisen kann leicht eine grundfalsche Vorstellung vom Wesen des Protoplasma herangerufen werden. Darum wiederhole ich: Protoplasma ist kein chemischer, sondern ein morphologischer Begriff, Protoplasma ist keine chemische Substanz noch so zusammengesetzter Art, sondern ein Gemenge zahlreicher, chemischer Stoffe, die wir uns als kleinste Theilchen zu einem wunderbar complicirten Bau mit einander vereinigt vorzustellen haben.
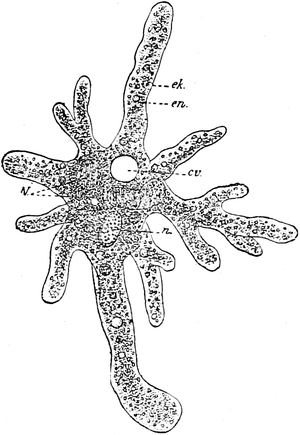
Fig. 2. Amoeba Proteus.
Nach L
EIDY
. Aus R
ICH
. H
ERTWIG
.
n.
Kern.
cv.
Contractile Vacuole.
N.
Nahrungsballen.
en.
Körnerplasma.
ek.
Hautplasma.
Chemische Substanzen zeigen in verschiedenen Aggregatzuständen (das Haemoglobin zum Beispiel als Bestandtheil der Blutkörperchen, im Wasser gelöst oder in Krystallform) übereinstimmende Eigenschaften; Protoplasma dagegen lässt sich nicht in andere Aggregatzustände überführen, ohne sofort aufzuhören, Protoplasma zu sein. Denn seine wesentlichen Eigenschaften, in denen sich sein Leben äussert, beruhen eben auf einer bestimmten Organisation. Ebenso wie die hauptsächlichen Eigenschaften einer Marmorstatue in der Form bestehen, die Künstlerhand dem Marmor gegeben hat, und wie eine Statue aufgehört hat, eine solche zu sein, wenn sie in kleine Marmorsteinchen zerschlagen ist (Nägeli II. 28), so ist auch ein Protoplasmakörper nach Zerstörung der Organisation, auf welcher sein Leben beruht, kein Protoplasma mehr; wir untersuchen in den abgetödteten, mit Reagentien behandelten Zellen streng genommen nur die stark veränderten Trümmer desselben.
Die Chemie wird vielleicht in absehbarer Zeit so weit fortgeschritten sein, dass sie Eiweisskörper durch Synthese künstlich darzustellen vermag. Einen Protoplasmakörper zu bilden, wäre dagegen ein ähnliches Beginnen, wie der Versuch Wagners, einen Homunculus in der Phiole auszukrystallisiren. Denn nach allen unseren Erfahrungen entstehen Protoplasmakörper auf keinem andern Wege als durch Fortpflanzung aus vorhandenem Protoplasma; ihre heutige Organisation ist daher das Product einer ausserordentlich langen historischen Entwicklung.
Was für Substanzen jedem lebenden Protoplasma eigenthümlich sind, ist sehr schwer chemisch zu bestimmen. Denn abgesehen davon, dass schon jeder Eingriff den leicht zersetzbaren Körper wesentlich verändert, wird auch noch dadurch die Untersuchung erheblich erschwert, dass ausser dem Protoplasma in jeder Zelle Stoffwechselproducte der verschiedensten Art mit eingeschlossen sind, die sich nicht leicht absondern lassen. In dem complicirten Stoffgemenge legt man als eigentlichen Trägern der Lebensprocesse einen besonderen Werth den Proteinsubstanzen bei, den complicirtesten organischen Körpern, die es gibt, und über deren chemische Constitution die Analyse noch wenig sichere Aufschlüsse gegeben hat. Ihre complicirte Structur beruht in erster Linie auf den ganz aussergewöhnlichen, chemischen Eigenschaften des Kohlenstoffs (Haeckel II. 15). In den Proteinsubstanzen haben sich dem Kohlenstoff 4 andere Elemente, Wasserstoff, Sauerstoff, Stickstoff und Schwefel beigesellt, in einem Verhältniss, welches man durch die Formel C72H106N18SO22 (Zusammensetzung eines Eiweissmolecüls) auszudrücken versucht hat (Nägeli II. 28).
Unter den verschiedenen Arten der Proteinkörper (Albumine, Globuline, Fibrine, Plastine, Nucleine etc.) scheint für das Protoplasma besonders nur das Plastin charakteristisch zu sein, (Reinke II. 32, Schwarz II. 37, Zacharias II. 44); dasselbe ist im Wasser und 10% Kochsalz und 10% schwefelsaurer Magnesia unlöslich; in verdünnter Essigsäure wird es gefällt, in concentrirter zur Aufquellung gebracht; in concentrirter Salzsäure wird es gefällt; es widersteht sowohl der Pepsin- als der Trypsinverdauung. Es färbt sich wenig oder gar nicht in basischen, dagegen in sauren Anilinfarben (Eosin und S-Fuchsin).
Daneben finden sich in geringerer Menge Globuline und Albumine, die auch in gelöstem Zustand im Zellsaft der Pflanzen vorkommen.
Das Protoplasma ist sehr reich an Wasser, welches, wie Sachs (II. 33) bemerkt, zu seiner Molekularstructur in demselben Sinne gehört, wie z. B. das Krystallwasser zur Structur sehr vieler Krystalle nöthig ist, die ihre krystallinische Form durch Entziehung des Krystallwassers verlieren. An frischen Fruchtkörpern von Aethalium septicum fand Reinke (II. 32) 71,6% Wasser und 28,4% bei 100 Grad getrocknete Substanz. 66% Flüssigkeit liess sich durch Auspressen erhalten.
Im Protoplasma kommen ferner stets eine Anzahl verschiedener Salze vor und bleiben bei der Verbrennung desselben als Asche zurück. Bei Aethalium septicum enthält die letztere an Grundstoffen Chlor, Schwefel, Phosphor, Kalium, Natrium, Magnesium, Calcium, Eisen.
Lebendes Protoplasma gibt eine deutlich alkalische Reaction; rothes Lackmuspapier, sowie ein im Braunkohl vorkommender, von Schwarz verwandter, rother Farbstoff wird blau. Es ist dies bei Pflanzen auch dann der Fall, wenn der Zellsaft wie gewöhnlich sauer reagirt. Die alkalische Reaction rührt nach den Untersuchungen von Schwarz (II. 37) bei den Pflanzen von Alcali her, welches in dem lebenden Protoplasma an die Proteinkörper gebunden ist. Aethalium septicum entwickelt nach Reinke (II. 32) in getrocknetem Zustande Ammoniak.
Ausserdem lassen sich im Protoplasma stets die verschiedensten Stoffwechselproducte nachweisen, welche theils der progressiven, theils der regressiven Metamorphose angehören. Sie zeigen im thierischen und pflanzlichen Zellenkörper eine grosse Uebereinstimmung. Hier wie dort sind Pepsin, Diastase, Myosin, Sarkin, Glycogen, Zucker, Inosit, Dextrin, Cholestearin und Lecithin, Fette, Milchsäure, Ameisensäure, Essigsäure, Buttersäure etc. gefunden worden.
Als Beispiel für die quantitative Zusammensetzung einer Zelle einschliesslich ihres Kernes theilt Kossel (II. 35) in seinem Lehrbuch eine von Hoppe-Seyler ausgeführte Analyse der Eiterkörperchen mit. Nach derselben enthalten 100 Gewichtstheile organischer Substanz:
verschiedene Eiweissstoffe 13,762,
Nucleïn 34,257,
unlösliche Stoffe 20,566,
Lecithin 14,383,

Fette
Cholestearin 7,400,
Cerebrin 5,199,
Extractivstoffe 4,433.
In der Asche fand sich Kalium, Natrium, Eisen, Magnesium, Calcium, Phosphorsäure und Chlor.
In physikalischer Hinsicht liess sich zuweilen an Protoplasmafäden, in denen die Bewegung vorwiegend in einer Richtung vor sich ging, Doppelbrechung beobachten und zwar so, dass die optische Axe mit der Bewegungsrichtung zusammenfiel (Engelmann).
d) Feinere Protoplasmastructur.
Es wurde oben das Protoplasma als ein Stoffgemenge bezeichnet, in welchem wir uns die kleinsten Theilchen zu einem complicirten Bau mit einander verbunden vorzustellen haben. In diesen Wunderbau hat die Forschung noch tiefer einzudringen versucht, theils auf speculativem Wege, theils mit Hülfe mikroskopischer Beobachtung.
In der ersten Richtung hat Nägeli höchst bedeutsame Gedanken entwickelt, die in einem besonderen Abschnitt über die „Molecularstructur organisirter Körper“ ausführlicher dargestellt werden sollen.
In der zweiten Richtung sind in der Neuzeit zahlreiche Forscher, unter ihnen vor allen Dingen Frommann, Flemming, Bütschli und Altmann thätig gewesen. Zum Untersuchungsobject diente sowohl lebendes als auch durch geeignete Reagentien abgetödtetes Protoplasma, letzteres namentlich, nachdem durch verschiedene Färbemethoden kleinste Theilchen in ihm wahrnehmbar gemacht worden waren. So ist schon eine besondere, kleine Literatur über das Kapitel „Protoplasmastructur“ entstanden.
Ausgehend davon, dass das Protoplasma ein Gemisch von einer kleinen Menge fester Substanzen mit reichlicher Flüssigkeit ist, welchem Umstand es seinen eigenthümlichen, weichflüssigen Aggregatzustand verdankt, könnte man die Frage aufwerfen, ob bei Anwendung der stärksten Vergrösserungen es möglich ist, die festen Substanztheilchen von dazwischen ihnen enthaltenen Flüssigkeit optisch zu unterscheiden und in ihrer Anordnungsweise besondere Structuren zu erkennen. A priori braucht eine solche Unterscheidbarkeit nicht nothwendig zu sein, sofern die festen Substanztheilchen sehr klein sind oder in ihrem Lichtbrechungsvermögen von der Flüssigkeit nicht genügend verschieden sind. So nimmt in der später genauer auseinandergesetzten Micellartheorie Nägeli (II. 28) eine gerüstförmige Anordnung der festen Substanztheilchen an, welche sich aber wegen der geringen Grösse der hypothetischen Micellen unserer Wahrnehmung entzieht. Mit einem Wort, es kann das Protoplasma eine sehr verwickelte Structur haben, trotzdem es uns optisch als ein homogener Körper erscheint. Mit der Bezeichnung homogenes Protoplasma ist also nicht nothwendiger Weise das Urtheil verknüpft, dass das Protoplasma einer besonderen Structur oder Organisation entbehre.
In der Neuzeit, wo die starken Oel-Immersionssysteme bei den Untersuchungen ausgiebiger benutzt werden, häufen sich immer mehr die Angaben, dass dem Protoplasma eine optisch wahrnehmbare Structur allgemein zukäme; doch weichen die einzelnen Mikroskopiker in ihren Urtheilen so wesentlich auseinander, dass eine Vermittelung zwischen ihnen nicht möglich ist.
Auf der Tagesordnung der wissenschaftlichen Discussion stehen augenblicklich wenigstens vier sich befehdende Lehren, welche als Gerüsttheorie, als Schaum- oder Wabentheorie, als Filartheorie und als Granulatheorie charakterisirt werden können.
Die Gerüsttheorie ist von Frommann (II. 14), Heitzmann (II. 17), Klein (II. 21), Leydig (II. 26), Schmitz (II. 36) u. A. aufgestellt worden. Nach ihr besteht das Protoplasma aus einem sehr feinen Netzwerk von Fibrillen oder Fäserchen, in dessen Lücken die Flüssigkeit enthalten ist. Es gleicht daher im Allgemeinen einem Schwamm, oder seine Structur ist, wie man sich kurz ausdrückt, eine spongiöse. Die im Körnerplasma sichtbaren Mikrosomen sind nichts Anderes als die Knotenpunkte des Netzes.
Bei einem Ueberblick über diese Literatur wird man finden, dass unter der Bezeichnung „spongiöser Bau des Protoplasma“ zuweilen ganz heterogene Dinge zusammengeworfen worden sind. Theils beziehen sich die Beschreibungen auf gröbere Gerüstwerke, welche durch Einlagerung verschiedenartiger Stoffe in das Protoplasma, wie später noch ausführlicher besprochen werden wird, bedingt sind und daher nicht als eine dem Protoplasma als solchem anhaftende Structur bezeichnet und mit ihr zusammengeworfen werden dürfen. Dies gilt zum Beispiel für die Beschreibung der Becherzellen von List (II. 48, s. S. 31 Fig. 17). Theils sind netzförmige Structuren beschrieben und abgebildet worden, die, offenbar durch Gerinnung (durch einen Entmischungsvorgang) hervorgerufen, als Kunstproducte gedeutet werden müssen. Künstliche Gerüststructuren kann man sich z. B. leicht erzeugen, wenn man Eiweisslösungen oder Leimgallerte durch Zusatz von Chromsäure, Pikrinsäure oder Alkohol zur Gerinnung bringt. So zeichnet Heitzmann (II. 17) in sehr schematischer Weise in die verschiedensten Zellen des thierischen Körpers Netzwerke ein, welche dem wirklichen Zustand in keiner Weise entsprechen. Auch Bütschli bemerkt in seiner Literaturübersicht (II. 7b pag. 113), „es sei überhaupt häufig recht schwierig zu entscheiden, ob die von früheren Beobachtern beschriebenen Netzstructuren eigentliche feinste Plasmastructuren seien oder ob sie auf gröberen Vacuolisationen beruhen. Da sich beide sehr ähnlich sehen, könne man hierüber nur auf Grund der Grössenverhältnisse ein einigermaassen gesichertes Urtheil gewinnen.“ Bütschli fand durchgängig, dass die Maschenweite der eigentlichen Plasmastructuren kaum 1 μ überschreitet.
Wenn somit gegen viele Angaben gerechte Zweifel erhoben werden können, liegen anderen Beschreibungen (Frommann, Schmitz, Leydig etc.) wohl wirklich feinere Structuren des Zellkörpers zu Grunde.
In der Deutung der als Netzwerk beschriebenen Bilder nimmt Bütschli einen eigenen, von den genannten Forschern abweichenden Standpunkt ein, welcher ihn zur Aufstellung einer Schaum- oder Wabentheorie des Protoplasma (II. 7a, 7b) veranlasst hat.
Durch Vermischung von eingedicktem Olivenöl mit K2CO3 oder mit Kochsalz oder Rohrzucker gelang es ihm, feinste Schäume herzustellen, deren Grundmasse Oel ist, das von zahllosen, allseitig abgeschlossenen und von wässeriger Flüssigkeit erfüllten Räumchen durchsetzt ist (Fig. 3). Der Durchmesser der letzteren bleibt bei sehr feinen mikroskopischen Schäumen in der Regel unter 0,001 mm. Die kleinen Räumchen, die sich Bienenwaben vergleichen lassen und die verschiedenartigsten Polyëder darstellen können, werden durch feinste, das Licht etwas stärker brechende Oellamellen von einander getrennt. In der Anordnung der Waben muss nach physikalischen Regeln stets die Bedingung erfüllt sein, dass immer nur 3 Lamellen in einer Kante zusammenstossen. Auf dem optischen Durchschnitt treffen daher in einem Knotenpunkte immer nur 3 Linien zusammen. Waren im Oel vor der Schaumbildung feine Russpartikelchen vertheilt, so sammeln sich dieselben in den Knotenpunkten des Wabenwerks an. An feinen Schäumen lässt sich endlich noch eine oberflächliche Schicht nachweisen, in welcher die kleinen Waben in besonders eigenthümlicher Weise angeordnet sind in der Weise, dass ihre an die Oberfläche stossenden Scheidewände aus Oel senkrecht zu dieser gerichtet und daher auf dem optischen Durchschnitt parallel zu einander gelagert sind. Bütschli unterscheidet dieselbe als eine Alveolarschicht (Fig. 3 alv).
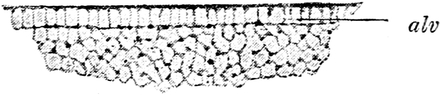
Fig. 3. Optischer Durchschnitt der Randpartie eines aus Olivenöl und Kochsalz hergestellten Oelschaumtropfens mit sehr deutlicher und relativ hoher Alveolarschicht
(
alv
).
Vergr. 1250. Nach B
ÜTSCHLI
Taf. III, Fig. 4.
Genau denselben Bau glaubt nun Bütschli für das Protoplasma aller pflanzlichen und thierischen Zellen (Fig. 4 u. 5) auf Grund seiner Untersuchung lebender und mit Reagentien behandelter Objecte annehmen zu müssen. Den Oellamellen, welche im künstlichen Schaum die Flüssigkeitströpfchen trennen, entspricht ein plasmatisches Gerüst. Auch hier sind in den Knotenpunkten desselben die Körnchen (Mikrosomen) zusammengedrängt. Auch hier ist der Protoplasmakörper nach aussen häufig zu einer Alveolarschicht differenzirt. Das Bild, welches andere Forscher als Faden- und Netzwerk mit communicirenden, die Flüssigkeit bergenden Maschenräumen beschreiben, deutet Bütschli als Waben- und Schaumwerk mit allseitig abgeschlossenen Räumen; er bemerkt aber selbst zu dieser Deutung, dass bei der Kleinheit der in Frage stehenden Structuren nach dem mikroskopischen Bilde allein eine feste Entscheidung darüber, ob Netz- oder Wabenstructur vorliege, sich nicht treffen lasse (II. 7b, pag. 140), denn „in beiden Fällen müsse das mikroskopische Bild dasselbe sein.“
Soll nun bei der Deutung die Aehnlichkeit mit künstlich hergestellten Schäumen, durch welche sich schliesslich Bütschli in seinem Urtheil bestimmen lässt, den Ausschlag geben?
Hier möchte ich doch zwei Bedenken geltend machen: erstens das Bedenken, dass für den Bau der Kernsubstanz, die ohne Zweifel dem Protoplasma in ihrer Organisation verwandt ist, die Wabentheorie nicht zutrifft. Denn während des Kerntheilungsprocesses treten mit grösster Deutlichkeit fädige Anordnungen in Form der Spindelfasern und Nucleïnfäden hervor, deren Existenz wohl von Niemand in Zweifel gezogen werden kann.
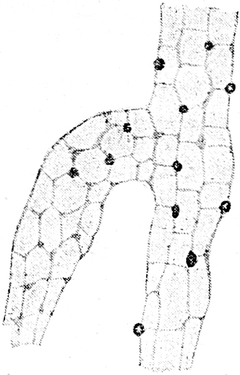
Fig. 4.
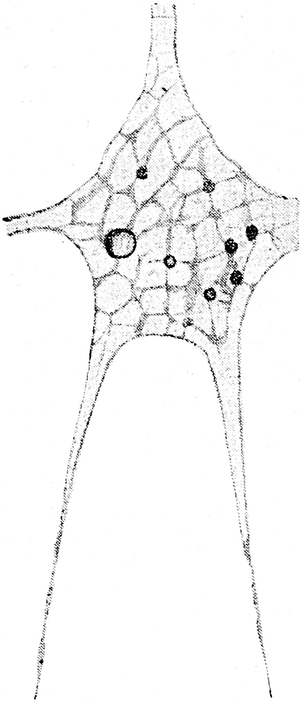
Fig. 5.
Fig. 4. Zwei lebende Plasmastränge aus den Haarzellen einer Malve. Etwa 3000fach vergr. Nach BÜTSCHLI Taf. II, Fig. 14.
Fig. 5. Schwimmhautartige Ausbreitung mit sehr deutlicher Structur aus dem Pseudopodiennetz einer Miliolide. Lebend etwa 3000fach vergr. Nach BÜTSCHLI Taf. II, Fig. 5.
Das zweite Bedenken ist mehr theoretischer Natur:
Oellamellen bestehen aus einer Flüssigkeit, die mit Wasser nicht mischbar ist. Soll der Vergleich zwischen Schaumstructur und Protoplasmastructur auf etwas mehr als einer oberflächlichen Aehnlichkeit beruhen, so müssten die den Oellamellen verglichenen Plasmalamellen aus einer Eiweisslösung oder flüssigem Eiweiss zusammengesetzt sein. Diese Annahme trifft nicht zu, weil Eiweisslösung mit Wasser mischbar ist, also auch mit dem Wabeninhalt sich mischen müsste; Eiweissschäume müssten mit Luft hergestellt werden. Um diese Schwierigkeit zu umgehen, nimmt Bütschli als chemische Grundlage der Gerüstsubstanz des Protoplasma eine Flüssigkeit an, die aus einer Combination von eiweissartigen und von Fettsäuremolecülen hervorgegangen sei. (II. 7b, pag. 199.) Diese Hülfsannahme dürfte, wie überhaupt die Annahme einer flüssigen Beschaffenheit der Gerüstsubstanz, wenig Beifall finden. Denn nach vielen Richtungen hin erscheint doch die theoretische Forderung eine wohlberechtigte, dass die Structurelemente des Protoplasma, mögen sie nun Fädchen eines Netzes oder Lamellen eines Wabenwerks oder Körnchen oder sonst was sein, einen festen Aggregatzustand haben. Das Protoplasma ist kein Gemengsel zweier nicht mischbarer Flüssigkeiten, wie Wasser und Oel, sondern besteht aus einer Verbindung fester, organischer Substanztheilchen mit reichlichem Wasser. Damit sind aber auch ganz andere physikalische Bedingungen gegeben (vergleiche den Abschnitt über Molecularstructur. S. 49).
Die dritte von den oben aufgeführten Lehren oder die Filartheorie ist an den Namen von Flemming (II. 10) geknüpft.
Bei der Untersuchung vieler Zellen im lebenden Zustand (Knorpel-, Leber-, Bindegewebs-, Ganglienzellen etc.) beobachtete Flemming im Protoplasma (Fig. 6) feinste Fädchen, die etwas stärker lichtbrechend sind, als die sie trennende Zwischensubstanz. In manchen Zellen sind die Fädchen kürzer, in anderen länger; bald sind sie spärlicher, bald reichlicher vorhanden. Ob sie von einander getrennt sind und durchweg an einander vorbeilaufen, oder ob sie sich zu einem Netz verbinden, konnte nicht bestimmt entschieden werden; wollte man sie sich aber auch zu einem Netz verbunden denken, so würden die Maschenräume sehr ungleich weit ausfallen. Flemming nimmt daher im Protoplasma zwei verschiedene Substanzen an, über deren chemische Natur und deren Aggregatzustand er sich nicht näher äussert: eine Fädchensubstanz und eine Zwischensubstanz, oder eine Filar- und Interfilarmasse. (Mitom und Paramitom.) Welche Bedeutung dieser Structur zukommt, worüber sich zur Zeit noch gar nichts aussagen lässt, muss der Zukunft anheimgegeben werden.
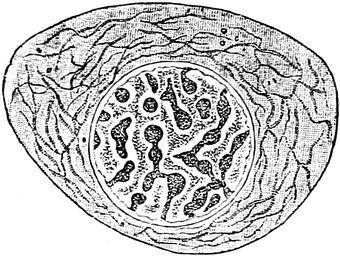
Fig. 6. Lebende Knorpelzelle der Salamanderlarve, stark vergrössert, mit deutlicher Filarsubstanz
(nach F
LEMMING
).
Aus H
ATSCHEK
Fig. 2.
In dem Abschnitt „Protoplasmastructur“ könnte auch auf die strahlige Anordnung des Protoplasma, wie sie auf gewissen Stadien der Kerntheilung vorübergehend beobachtet wird, oder auf das streifige Aussehen, welches das Protoplasma secretorischer Zellen so häufig zeigt, näher eingegangen werden. Da es sich aber hier um Structuren handelt, die durch besondere Verhältnisse verursacht werden, wollen wir erst an späterer Stelle auf sie zurückkommen.
In einer vierten Richtung endlich bewegen sich wieder die Bestrebungen Altmanns (II. 1), eine feinere Zusammensetzung des Protoplasma nachzuweisen (Granulatheorie). Dieser Forscher hat durch Ausbildung besonderer Methoden im Zellenleib kleinste Theilchen sichtbar gemacht, die er als Granula bezeichnet. Er conservirt die Organe in einem Gemisch von 5% Lösung von Kaliumbichromat und von 2%iger Ueberosmiumsäure und färbt die von ihnen angefertigten feinen Schnitte mit Säurefuchsin, wobei die Färbung durch alkoholische Pikrinsäurelösung schärfer differenzirt wird. In einer farblosen Grundsubstanz werden bei diesem Verfahren zahlreiche, kleinste, dunkelroth gefärbte Körnchen sichtbar gemacht, die entweder isolirt bald dichter, bald lockerer neben einander liegen oder in Reihen zu Fäden verbunden sind.
Altmann knüpft an diesen Nachweis eine weittragende Hypothese. Er erblickt in den Granula noch kleinere Elementarorganismen, aus denen die Zelle selbst wieder zusammengesetzt ist; er nennt sie die Bioblasten, schreibt ihnen den Bau eines organisirten Krystalls zu und betrachtet sie für gleichwerthig den Mikroorganismen, die sich auch als Einzelelemente in Haufen zu einer Zoogloea oder der Reihe nach in Fäden anordnen. „Wie in der Zoogloea die einzelnen Individuen durch eine gallertartige Ausscheidungssubstanz ihres Körpers mit einander verbunden und zugleich von einander getrennt sind, so dürfte dies auch bei den Granulis der Zelle der Fall sein; auch hier werden wir in der Umgebung derselben nicht nur Wasser oder Salzlösung als vorhanden annehmen dürfen, sondern ebenfalls eine mehr gallertartige Substanz (Intergranularsubstanz), deren Consistenz in manchen Fällen bis an den flüssigen Zustand heranreichen, in andern aber ziemlich derb sein wird. Für den ersten Fall spricht die grosse Beweglichkeit, die manchem Protoplasma eigen ist. Häuft sich die Intergranularsubstanz irgendwo in der Zelle ohne Granula an, so vermag sie hier ein echtes Hyaloplasma zu bilden, welches frei von lebenden Elementen ist, darum auch den Namen eines Protoplasma nicht verdient.“
Altmann definirt daher „das Protoplasma als eine Colonie von Bioblasten, deren einzelne Elemente, sei es nach Art der Zoogloea, sei es nach Art der Gliederfäden, gruppirt und durch eine indifferente Substanz verbunden sind“. „Der Bioblast ist daher die gesuchte morphologische Einheit aller organisirten Materie, von welcher alle biologischen Erwägungen in letzter Instanz auszugehen haben.“ Doch ist der Bioblast der Zelle keines isolirten Lebens fähig, er stirbt mit der Zelle ab. In ihr aber, so nimmt Altmann an, vermehrt er sich nur durch Theilung. (Omne granulum e granulo.)
Gegen die Altmann’sche Hypothese, soweit sie sich auf Deutung beobachteter Verhältnisse bezieht, lassen sich manche Einwände erheben. 1. Die kleinsten Mikroorganismen einer Zoogloea sind durch vielfache Uebergänge in der Grösse mit grösseren Spross- und Hefepilzen verbunden, die ihrem Bau nach von Zellen nicht zu unterscheiden sind und daher nach Altmann auch Colonien von Bioblasten sein müssten. Auch hat Bütschli bei grösseren Mikroorganismen eine Sonderung in Kern und Protoplasma und damit die Uebereinstimmung im Bau mit anderen Zellen wahrscheinlich gemacht. Die Geisseln, die bei vielen Mikroorganismen nachgewiesen sind, müssen auch als Zellorgane gedeutet werden. 2. Ueber die Beschaffenheit und Aufgabe der Granula in der Zelle sind wir noch viel zu wenig aufgeklärt, als dass sich nur irgendwie die Schlussfolgerung rechtfertigen liesse, durch welche sie zu den eigentlichen Lebenselementen der Zelle erhoben werden. Durch die Altmann’sche Hypothese wird der Werth, welchen man den Zellsubstanzen bisher zuertheilt hat, vollständig umgekehrt. Altmann’s Intergranularsubstanz, welche ihrem physiologischen Werth nach der Gallerte der Zoogloea gleich geschätzt wird, ist im Wesentlichen das Protoplasma der herrschenden Zellentheorie, also die Substanz, welche als die wichtigste Grundlage der Lebensprocesse betrachtet wird; die Granula dagegen gehören zum Theil wohl in die Kategorie der Protoplasmaeinschlüsse, denen man bisher eine minder bedeutungsvolle Rolle zuertheilt hat. So bezeichnet Altmann in der Pigmentzelle die Melaninkörnchen als die Bioblasten, das sie verbindende Protoplasma als Intergranularsubstanz. Ebenso kehrt Altmann beim Kern, wie bei der Beschreibung desselben hervorgehoben werden wird, den physiologischen Werth der Substanzen vollständig um, indem seine Granula im Kernsaft enthalten sind, die Intergranularsubstanz aber dem chromatinhaltigen Kernnetz entspricht.
Mit dem Worte Granula hat nach unserer Auffassung Altmann Gebilde von sehr verschiedenem morphologischen Werth, die zum Theil in die Kategorie der Protoplasmaprodukte gehören, zusammengefasst. Ihre Untersuchung durch neue Methoden zugänglicher gemacht zu haben, wird das Hauptverdienst der auf sie bezüglichen Arbeiten von Altmann bleiben, während die auf sie gegründete Bioblastentheorie sich wenig Anhänger erworben haben dürfte. (Man vergleiche auch den Schluss des neunten Capitels.)
e) Gleichartigkeit des Protoplasma als Substanz, Verschiedenheit der Zellkörper.
Im ganzen Organismenreich tritt uns das Protoplasma als eine im Wesentlichen gleichartig aussehende Substanz entgegen. Mit unseren jetzigen Untersuchungsmitteln sind wir nicht in der Lage, zwischen dem Protoplasma einer thierischen Zelle oder einer Pflanzenzelle oder eines einzelligen Organismus irgend welche durchgreifende Unterschiede ausfindig zu machen. Diese Gleichartigkeit ist naturgemäss nur eine scheinbare, nur eine auf der Unzulänglichkeit der Untersuchung beruhende. Denn da in jedem Organismus der Lebensprocess sich in einer ihm eigenthümlichen Weise abspielt, das Protoplasma aber, abgesehen vom Kern, der hauptsächliche Sitz der einzelnen Lebensprocesse ist, so müssen Verschiedenheiten derselben auch in Verschiedenheiten der stofflichen Grundlage, also des Protoplasmas, begründet sein. Wir müssen also zwischen dem Protoplasma der verschiedenen Organismen Unterschiede in der stofflichen Zusammensetzung und in der Structur in der Theorie voraussetzen. Wahrscheinlich liegen aber diese wichtigen Unterschiede schon auf molecularem Gebiete.
Trotz gleichartigen Aussehens des Protoplasma können dagegen die einzelnen Zellkörper, von denen das Protoplasma ja nur einen grösseren oder geringeren Bestandtheil ausmacht, als Ganzes genommen sehr verschiedenartige Anblicke darbieten. Theils rührt dies von der äusseren Form, hauptsächlich aber davon her, dass in das Protoplasma bald diese, bald jene Stoffe in einer von ihm unterscheidbaren Weise abgelagert sind. Zuweilen kann dies in solcher Masse geschehen, dass der ganze Zellkörper fast allein aus solchen, dem Protoplasma in anderen Fällen fehlenden Stoffen zu bestehen scheint. Denken wir uns die letzteren entfernt, so entstehen naturgemäss in dem Zellkörper zahlreiche grössere und kleinere Lücken, zwischen denen die protoplasmatische Grundlage der Zelle als ein zuweilen ausserordentlich feines Fach- und Gerüstwerk zu Tage tritt. Dieses darf nicht, wie schon hervorgehoben wurde (S. 18), mit der netzförmigen Anordnung verwechselt werden, welche nach der Annahme mancher Forscher der protoplasmatischen Substanz als solcher zukommen soll und im Capitel „Protoplasmastructur“ besprochen wurde.
Man hat für die im Protoplasma eingeschlossenen Substanzen die Namen Deutoplasma (van Beneden) oder Paraplasma (Kupffer II. 24) vorgeschlagen. Da man aber mit dem Wort Plasma doch immer die Vorstellung einer Eiweisssubstanz verbindet, die Einschlüsse aber auch aus Fett, Kohlenhydraten, Saft und manchem Anderen bestehen können, dürfte sich der Gebrauch jener beiden Bezeichnungen nicht empfehlen, und es ist besser, anstatt dessen entweder allgemein von inneren Plasmaproducten und Zelleinschlüssen oder, je nach ihrer Bedeutung, von Reserve- und Secretstoffen oder speciell von Dotterplättchen, Fetttropfen, Stärkekörnern, Pigmentkörnchen etc. zu reden.
Zwischen dem Protoplasma und den Substanzen, die als Zelleinschlüsse zusammengefasst werden können, besteht ein ähnlicher Unterschied, wie zwischen den Stoffen, die die Organe unseres Körpers ausmachen, und den Stoffen, die erstens als Nahrung in unseren Körper aufgenommen werden und zweitens in flüssigem Zustande als Ernährungssaft durch alle Organe circuliren. Die ersteren, welche vom jeweiligen Ernährungszustand des Körpers weniger abhängig und geringerem Wechsel unterworfen sind, nennt man in der Physiologie Dauerstoffe, die letzteren Verbrauchsstoffe. Dieselbe Unterscheidung ist auch für die den Zellkörper zusammensetzenden Substanzen anwendbar. Das Protoplasma ist ein Dauerstoff, dagegen die in ihm eingeschlossenen Substanzen seine Verbrauchsstoffe.
f) Verschiedene Beispiele für den Bau des Zellkörpers.
Nach der vorausgegangenen Orientirung über die chemisch-physikalischen und morphologischen Eigenschaften des Zellkörpers sollen einige besonders prägnante Beispiele dazu dienen, das im Allgemeinen Ausgeführte noch anschaulicher zu machen. Zu dem Zwecke vergleichen wir niedere einzellige Organismen, pflanzliche und thierische Zellen und wählen zunächst solche Beispiele, bei denen der Körper fast ausschliesslich aus Protoplasma besteht, und zweitens Beispiele, in denen der Zellkörper mit diesen oder jenen Einschlüssen beladen und dadurch in seinem Aussehen erheblicher verändert ist.
Wichtige Objecte für das Studium des Zellkörpers bilden im Wasser und in feuchter Erde lebende, einzellige Organismen, wie Amöben, Schleimpilze und Rhizopoden, ferner Lymphkörperchen und weisse Blutkörperchen der Wirbelthiere, junge Pflanzenzellen.
1) Zellen, deren Körper fast ausschliesslich aus Protoplasma besteht.
Eine Amöbe (Fig. 7) ist ein kleines Klümpchen von Protoplasma, das gewöhnlich an seiner Oberfläche einige kurze, lappige Fortsätze (Pseudopodien oder Scheinfüsschen) nach aussen hervorstreckt. Der Körper ist vollständig nackt, das heisst, er ist gegen die umgebenden Medien nicht durch eine besondere dünne Hülle oder Membran abgegrenzt; nur ist die oberflächlichste Schicht des Protoplasma (Hautschicht) (ek) frei von Körnchen und daher glasartig durchsichtig, in grösserer Ausdehnung namentlich an den lappigen Scheinfüsschen; unter dem Hautplasma folgt das dunklere und flüssigere Körnerplasma (en), in welchem auch der bläschenförmige Zellenkern (n) eingeschlossen ist.
Grosse Aehnlichkeit mit einer Amöbe zeigen die weissen Blutkörperchen und die Lymphkörperchen der Wirbelthiere, nur dass sie sehr viel kleiner sind. (Fig. 8.) Frisch dem lebenden Thiere entnommen, stellen sie mehr oder minder runde Protoplasmaklümpchen dar mit einer kaum wahrnehmbaren hyalinen Hautschicht und einer körnigen Innenmasse, in deren Mitte der Kern im frischen Zustand nur undeutlich, oft gar nicht wahrzunehmen ist. Nach einiger Zeit streckt das Körperchen den Scheinfüsschen der Amöben vergleichbare Fortsätze an seiner Oberfläche hervor.
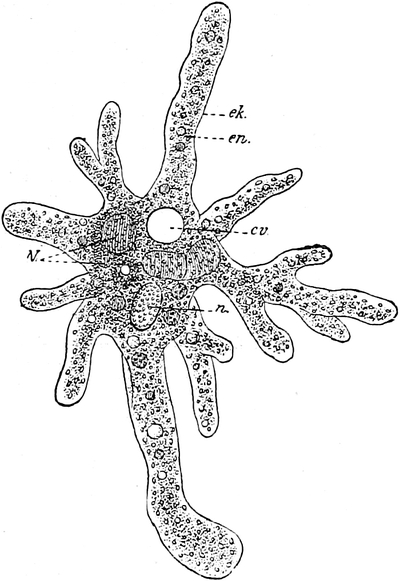
Fig. 7.
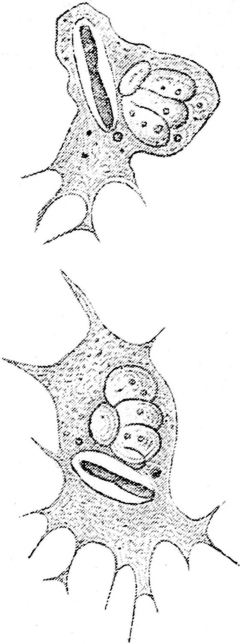
Fig. 8.
Fig. 7. Amöba proteus. Nach LEIDY. Aus R. HERTWIG Fig. 16. n. Kern. cv. Contractile Vacuole. N. Nahrungsballen. en. Körnerplasma. ek. Hautplasma.
Fig. 8. Ein Leukocyt des Frosches, in dem ein Bakterium eingeschlossen ist und verdaut wird. Das Bakterium durch Vesuvin gefärbt. Die beiden Figuren repräsentiren 2 Stadien der Bewegung ein- und derselben Zelle. Nach METSCHNIKOFF Fig. 54.
Unter sehr abweichender Form erscheint dagegen der gleichfalls nackte Protoplasmakörper der Myxomyceten oder Rhizopoden. Der bei uns bekannteste Schleimpilz, welcher die Lohblüthe bildet, das Aethalium septicum, überzieht während seines vegetativen Zustandes als zusammenhängende dünne Protoplasmaschicht (Plasmodium) die Oberfläche der Gerberlohe in grosser Ausdehnung.
Ein ihm verwandter Schleimpilz ist das Chondrioderma, von welchem ein kleines Stück des Randes in Fig. 9 abgebildet ist.
Nach dem Rande zu löst sich das Plasmodium in zahlreiche Protoplasmafäden auf, die theils dicker, theils ungemein fein sind und sich unter einander zu einem zierlichen Netzwerk verbinden. Auch hier lassen dickere Fäden eine dünne Schicht von homogenem Hautplasma und darin eingeschlossenem Körnerplasma erkennen, während an den feineren Fäden eine solche Unterscheidung nicht möglich ist. In der zuweilen sehr umfangreichen Protoplasmamasse finden sich sehr zahlreiche, kleinste Zellkerne überall vertheilt.
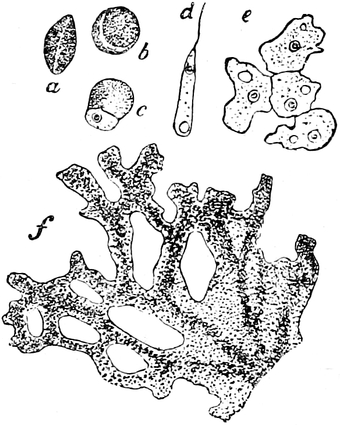
Fig. 9. Chondrioderma difforme.
Nach S
TRASBURGER
.
f
Theil eines älteren Plasmodiums.
a
trockene Spore.
b
Dieselbe im Wasser quellend.
c
Spore mit austretendem Inhalt.
d
Zoospore.
e
aus Umwandlung der Zoospore hervorgegangene Amöben, die sich zum Plasmodium zu vereinen anfangen. (Bei
d
und
e
Kern u. contractile Vacuolen zu sehen.)
Unter den Rhizopoden, welche in sehr verschiedenen Arten im süssen und salzigen Wasser vorkommen, ist ein durch Max Schultze’s Untersuchungen (I. 29) besonders berühmt gewordenes Object, die Gromia oviformis (Fig. 10). Der körnige, mit einigen kleinen Zellkernen versehene Protoplasmakörper füllt theils ein ovales Gehäuse aus, das an einem Pol eine weite Oeffnung trägt, theils dringt es an letzterer nach aussen hervor und überzieht die Oberfläche des Gehäuses in dünner Schicht. War der Organismus nicht gestört worden, so strahlen vom herausgetretenen Protoplasma feinste Fädchen (Pseudopodien) oft von erstaunlicher Länge nach allen Richtungen in’s Wasser aus; manche gabeln sich, andere lösen sich in zahlreichere Fädchen auf oder senden Seitenzweige ab, durch welche sie sich mit benachbarten Pseudopodien verbinden.
Die so eigenthümliche Körpersubstanz der eben beschriebenen niedersten Organismen wurde von Dujardin als Sarcode bezeichnet, da sie wie die Muskelsubstanz höherer Thiere Bewegungen ausführen kann. Unter dem Eindruck der Schleiden-Schwann’schen Zellentheorie suchte man an der Sarcode eine Zusammensetzung aus kleinsten Zellen nachzuweisen und in dieser Weise die Sarcodeorganismen dem Zellenschema zu unterwerfen, bis in ganz anderer Richtung die Lösung gefunden wurde. Forscher wie Cohn (I. 7), Unger verglichen zuerst die Sarcode wegen der Gleichartigkeit ihrer Lebenserscheinungen dem protoplasmatischen Inhalt einer Pflanzenzelle. Durch Max Schultze (I. 29), de Bary (I. 2) und Haeckel (I. 10) wurde die Identität von Sarcode und Protoplasma der thierischen und pflanzlichen Zellen über allen Zweifel festgestellt und namentlich von dem erstgenannten Forscher zu der oben schon beschriebenen Reform der Zellentheorie und zur Begründung seiner Protoplasmatheorie (siehe S. 7) benutzt.
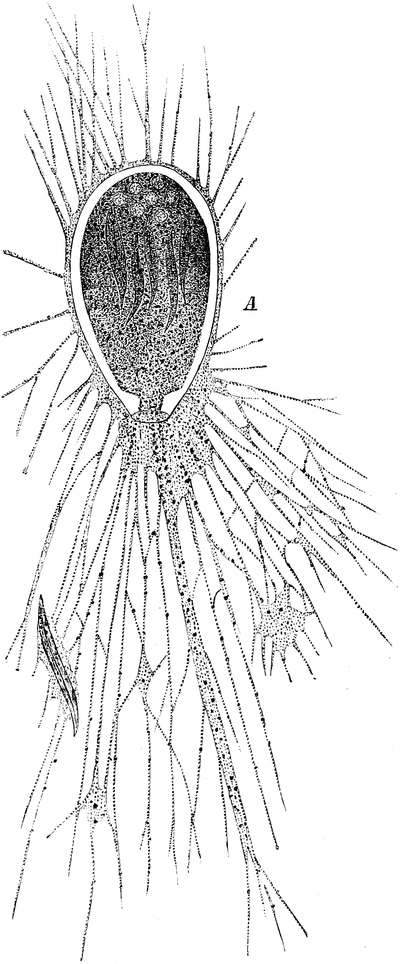
Fig. 10. Gromia oviformis.
Nach M. S
CHULTZE
.
In den Amöben, Lymphzellen, Schleimpilzen und Rhizopoden lernten wir nackte Zellkörper kennen; bei Pflanzen und Thieren dagegen sind die Zellkörper, bei ersteren fast stets, bei letzteren sehr häufig in eine deutlich unterscheidbare, zuweilen sehr dicke und feste Substanz (Membran, Intercellularsubstanz) eingehüllt und stellen dann mit ihr zusammen ein Kämmerchen oder eine Zelle in des Wortes eigentlichster Bedeutung dar. Als Beispiele dienen junge Zellen aus der Nähe des Vegetationspunktes einer Pflanze und Knorpelzellen einer Salamanderlarve.
An den Vegetationspunkten der Pflanzen (Fig. 12 A) sind die Zellen, die sich hier lebhaft vermehren, sehr klein und thierischen Zellen sehr ähnlich. Sie werden von einander nur durch sehr dünne Cellulosewände abgegrenzt. Die kleinen Hohlräume werden vollständig vom Zellkörper ausgefüllt, der, vom Kern und von Chlorophyllbildern abgesehen, nur aus feinkörnigem Protoplasma besteht.
Die Knorpelzellen junger Salamanderlarven empfiehlt Flemming als das sicherste und beste Object, an welchem sich Protoplasmastructuren im lebenden Zustand studiren lassen. Der Zellkörper, welcher während des Lebens wie bei den jungen Pflanzenzellen die Höhle im Innern der Knorpelgrundsubstanz ganz ausfüllt, ist „von ziemlich stark lichtbrechenden Fäden von weniger als 1 μ Durchmesser und gewundenem Verlauf durchzogen; sie sind meist um den Kern dichter angeordnet und zugleich mehr wellig verschlungen; die Peripherie der Zellen wird bald von Fäden ganz oder fast freigelassen, bald auch nicht, zuweilen sind sie hier selbst recht dicht.“
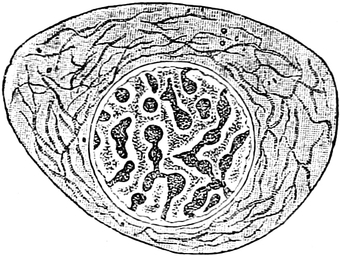
Fig. 11. Lebende Knorpelzelle der Salamanderlarve, stark vergrössert, mit deutlicher Filarsubstanz
(nach F
LEMMING
).
Aus H
ATSCHEK
Fig. 2.
2) Zellkörper, die in ihrem Protoplasma zahlreiche und verschiedene Einschlüsse enthalten.
Bei Pflanzen und einzelligen Organismen schliesst das Protoplasma sehr häufig Flüssigkeitstropfen ein, in denen Salze, Zucker und Albuminate in gelöstem Zustand (circulirendes Eiweiss) enthalten sind. Je mehr wir uns von den Vegetationspunkten einer Pflanze, wo die oben beschriebenen kleinsten, rein protoplasmatischen Elementartheile angehäuft sind, weiter entfernen (Fig. 12 A), um so mehr vergrössern sich unter beträchtlicher Verdickung der Cellulosemembran die einzelnen Zellkammern (C) und erreichen oft mehr als das 100fache ihrer ursprünglichen Grösse. Dieses Wachsthum beruht indessen zum kleinsten Theile auf einer erheblichen Vermehrung des Protoplasmakörpers. Nie wird man den Raum einer so grossen Pflanzenzelle ausschliesslich von körnig-schleimiger Substanz ausgefüllt sehen. Die Vergrösserung der Zelle wird vielmehr hauptsächlich dadurch herbeigeführt, dass der ursprünglich kleine Protoplasmakörper an der Vegetationsspitze Flüssigkeit aufnimmt und als Zellsaft in seinem Innern in kleinen Hohlräumen, den Vacuolen, abscheidet. Er gewinnt dadurch ein schaumiges Aussehen (Fig. 12 B, s).
Von einer Protoplasmaanhäufung, in welcher der Kern liegt, gehen dickere und feinere Protoplasmahäutchen aus, welche als Scheidewände die einzelnen Safträume von einander trennen und sich an der Oberfläche zu einer zusammenhängenden Wandschicht (Primordialschlauch) verbinden, welche sich der Innenfläche der vergrösserten und durch Wachsthum verdickten Cellulosemembran (h) anschmiegt.
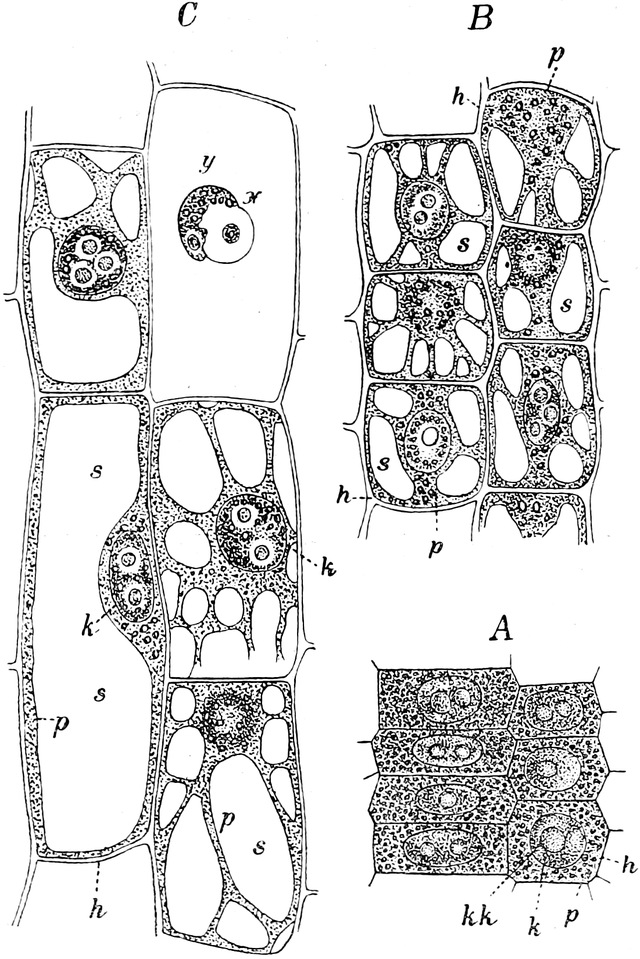
Fig. 12. Parenchymzellen aus der mittleren Schicht der Wurzelrinde von Fritillaria imperialis; Längsschnitte, nach 550maliger Vergrösserung.
Nach S
ACHS
(
II. 33
) Fig. 75.
A
dicht über der Wurzelspitze liegende, sehr junge Zellen, noch ohne Zellsaft;
B
die gleichnamigen Zellen etwa 2 Millimeter über der Wurzelspitze, der Zellsaft
s
bildet im Protoplasma
p
einzelne Tropfen, zwischen denen Protoplasmawände liegen;
C
die gleichnamigen Zellen etwa 7–8 Millimeter über der Wurzelspitze; die beiden Zellen rechts unten sind von der Vorderfläche gesehen, die grosse Zelle links unten im optischen Durchschnitt gesehen; die Zelle rechts oben durch den Schnitt geöffnet; der Zellkern lässt unter dem Einfluss des eindringenden Wassers eine eigenthümliche Quellungserscheinung wahrnehmen (
x
y
).
k
Kern.
kk
Kernkörper.
h
Membran.
Hiervon lassen sich zwei verschiedene Zustände ableiten, welche die ausgewachsene Pflanzenzelle darbietet. Durch weitere Vermehrung des Zellsaftes werden die Vacuolen vergrössert und die Scheidewände verdünnt. Letztere reissen endlich theilweise ein, so dass die einzelnen Safträume sich durch Oeffnungen in Verbindung setzen und einen einzigen zusammenhängenden Saftraum bilden. Der Protoplasmakörper hat sich mithin jetzt umgewandelt in eine ziemlich dünne, der Cellulosemembran anliegende Schicht und mehr oder minder zahlreiche Protoplasmabalken und Fäden, welche den einheitlichen grossen Flüssigkeitsraum durchsetzen. (Fig. 12 C rechts u. Fig. 13.) In anderen Fällen endlich sind auch diese Protoplasmabalken im Innern der Zelle geschwunden. Der Protoplasmakörper besteht dann einzig und allein noch aus einem dünnen Schlauch, welcher die Innenfläche des Kämmerchens, um einen Ausdruck von Sachs (II. 33) zu gebrauchen, wie eine Tapete die Zimmerwand bedeckt und einen einzigen grossen Saftraum einschliesst. (Fig. 12 C links untere Zelle u. Fig. 59.) In sehr grossen Zellen ist dieser Schlauch zuweilen so dünn, dass man ihn, vom Zellkern abgesehen, selbst bei starker Vergrösserung kaum wahrnimmt und dass man, um ihn klar zur Anschauung zu bringen, besondere Untersuchungsmethoden anwenden muss.
Das sind die Elementartheile, an deren Studium sich die älteren Forscher wie Treviranus, Schleiden und Schwann ihre Vorstellung vom Wesen der Zelle gebildet hatten. Kein Wunder daher, wenn sie in der Zellenmembran und dem Kern die wesentlichen Zellentheile erblickten, die Bedeutung des Protoplasma aber ganz übersahen. Dass letzteres auch in der Pflanzenzelle der eigentliche lebende Körper ist und ohne Zusammenhang mit der Membran zu leben vermag, ist durch folgende Beobachtung, die in der Geschichte der Zellentheorie eine grosse Rolle gespielt hat (I. 7), über jeden Zweifel sicher zu stellen. Bei vielen Algen (Oedogonium, Fig. 14) löst sich der gesammte Protoplasmakörper zur Zeit der Fortpflanzung von der Cellulosewand ab, zieht sich unter Auspressung von Flüssigkeit zu einem geringeren Volumen zusammen, so dass er den Kammerraum nicht mehr ganz ausfüllt, und bildet eine bald kugelig, bald oval gestaltete nackte Schwärmspore (A). Diese sprengt nach einiger Zeit ihre alte Hülle, schlüpft durch die entstandene Oeffnung ins Freie und bewegt sich im Wasser mit Wimpern (C), die sie auf ihrer Oberfläche hervorgetrieben hat, ziemlich geschwind fort, um nach einiger Zeit zur Ruhe zu kommen (D) und auf ihrer Oberfläche eine neue zarte Membran auszuscheiden. So hat die Natur selbst uns den besten Beweis geliefert, dass der Protoplasmakörper an sich der eigentliche lebendige Elementarorganismus ist.
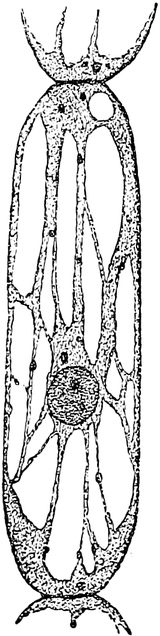
Fig.13
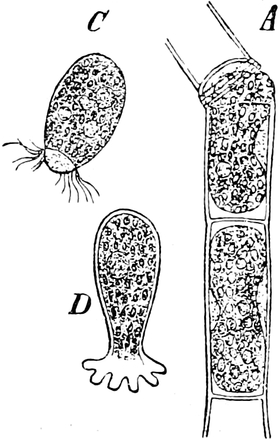
Fig. 14.
Fig. 13. Eine Zelle aus einem Staubfadenhaar von Tradescantia virginica. Vergr. 240. Nach STRASBURGER, Botanisches Praktikum Fig. 23.
Fig. 14. Oedogonium in Zoosporenbildung. Nach SACHS. Aus R. HERTWIG, Zoologie Fig. 110. A ein Stück des Algenfadens mit ausschlüpfendem Zellinhalt. C aus dem Inhalt hervorgegangene Zoospore. D Zoospore festsitzend in Keimung.
Eine ebenso reiche Vacuolenbildung und Saftabscheidung, wie sie sich in Pflanzenzellen findet, zeigt uns zuweilen auch das hüllenlose Protoplasma niederer, einzelliger Organismen, namentlich einzelner Rhizopoden und Radiolarien. So bietet uns der in Figur 15 dargestellte Körper eines Actinosphärium ein völlig schaumiges Aussehen dar, ähnlich einem durch Schlagen hergestellten feinen Eiweiss- oder Seifenschaum. Zahllose kleinere und grössere, mit Flüssigkeit erfüllte Vacuolen durchsetzen den ganzen Körper und sind nur durch feine, zuweilen kaum messbar dicke Scheidewände von Protoplasma getrennt, das aus einer homogenen Grundsubstanz mit eingebetteten Körnchen besteht.
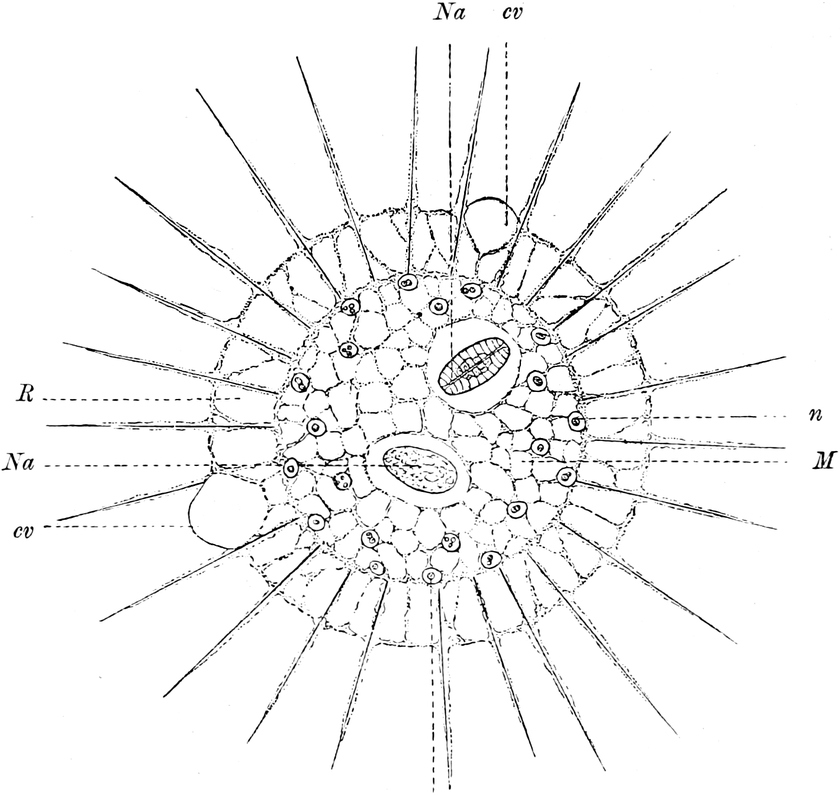
Fig. 15. Actinosphärium Eichhorni.
Nach R. H
ERTWIG
, Zoologie Fig. 117.
M
Marksubstanz mit Kernen (
n
).
R
Rindensubstanz mit contractilen Vacuolen (
ev
),
Na
Nahrungskörper.
Durch die Vacuolenbildung wird der Protoplasmakörper aufgelockert und werden Flächen in ihm geschaffen, an denen die Protoplasmatheilchen in unmittelbare Wechselwirkung zu der in den Vacuolen enthaltenen Nährlösung treten können. Durch die ganze Einrichtung wird offenbar die Stoffaufnahme und Abgabe ungemein erleichtert. Sie kann als innere Oberflächenvergrösserung der äusseren Oberflächenvergrösserung gegenübergestellt werden, welche sich uns in der Bildung reichverzweigter Pseudopodien (Fig. 10) darbietet und wohl dem gleichen Zwecke dient.
Im Gegensatz zu den pflanzlichen Zellen findet in den thierischen Elementartheilen Vacuolenbildung und Saftausscheidung ausserordentlich selten, wie z. B. in den Chordazellen, statt; dagegen werden hier häufiger Einschlüsse gebildet, die einen gequollenen oder festen Aggregatzustand darbieten, Glycogen- und Schleimtropfen, Fettkugeln, Eiweissschollen etc. Wenn dieselben sehr reichlich und zahlreich entwickelt sind, so kann im Zellkörper das Protoplasma auch zu einem Schaumwerk, wie bei einem Actinosphärium (Fig. 15) oder einem Netzwerk, wie in der Tradescantiazelle (Fig. 13) umgewandelt sein, nur dass die Zwischenräume anstatt mit Saft mit dichteren Substanzen erfüllt sind.
Die schönsten Beispiele bieten uns manche Arten thierischer Eizellen. Die ganz ausserordentliche Grösse, welche dieselben in manchen Fällen erreichen, beruht weniger auf einer Zunahme von Protoplasma, als vielmehr auf einer Ablagerung chemisch sehr verschiedenartiger, bald geformter, bald ungeformter Reservestoffe, die für spätere Verwerthung im Stoffwechsel der Zelle bestimmt sind. Oft scheint die Eizelle fast ganz aus ihnen zu bestehen. Das Protoplasma füllt nur die kleinen Lücken zwischen ihnen aus, wie der Mörtel zwischen den Steinen eines Mauerwerks (Fig. 16); auf dem Durchschnitt durch ein Ei erscheint es als ein zartes Netzwerk, in dessen kleineren und grösseren Maschen die Reservestoffe liegen. Nur an der Oberfläche des Eies und in der Umgebung des Keimbläschens findet sich Protoplasma als eine dickere, zusammenhängende Schicht.
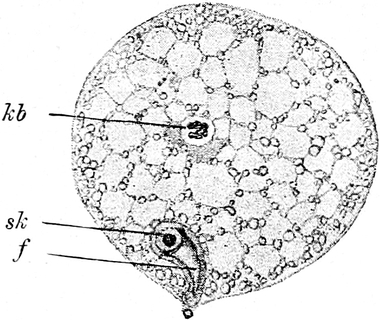
Fig. 16.
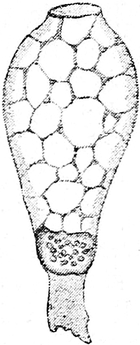
Fig. 17.
Fig. 16. Eben befruchtetes Ei von Ascaris megalocephala. Nach VAN BENEDEN. Aus O. HERTWIG Fig. 22. sk Eingedrungener Samenkörper mit dem Samenkern. f Fettglänzende Substanz des Samenkörpers. kb Keimbläschen.
Fig. 17. Becherzelle aus dem Blasenepithel von Squatina vulgaris, in Müller’scher Flüssigkeit erhärtet. Nach LIST Taf. I, Fig. 9.
Ein zweites Beispiel eines schönen, durch Stoffeinlagerung hervorgerufenen, protoplasmatischen Gerüstwerks bieten uns die Schleimzellen der Wirbelthiere (Fig. 17) und wirbellosen Thiere dar. Sie lassen einen der Epitheloberfläche zugewandten, ausgeweiteten und einen engeren, basalen Abschnitt unterscheiden. Der erstere besteht hauptsächlich aus homogener, glänzender Secretmasse, der mucigenen Substanz, die aus dem Becher durch eine kleine Oeffnung am freien Ende desselben zeitweise entleert und in Schleim umgewandelt wird. Das Protoplasma durchsetzt in feinen Fäden, die sich zu einem weitmaschigen Netzwerk verbinden, die Secretmasse und bildet nur im Fusstheil der Zelle einen compacteren Körper, in welchem dann auch der Kern eingeschlossen ist.
II. Die chemisch-physikalischen und morphologischen Eigenschaften des Zellenkerns. (Nucleus.)
Ebenso wichtig wie das Protoplasma ist für das Wesen der Zelle der Zellenkern; derselbe wurde 1833 von Robert Brown (I. 5) in Pflanzenzellen zuerst entdeckt; bald darauf machten ihn Schleiden (I. 28) und Schwann (I. 31) zum Mittelpunkt ihrer Theorie der Zellenbildung. Dann trat das Studium des Zellenkerns eine Zeit lang in den Hintergrund, als man mit den interessanten Lebenserscheinungen des Protoplasma näher bekannt wurde. Erst im Laufe der letzten 20 Jahre ist eine Entdeckung der andern auf dem Gebiet der Kernlehre gefolgt und hat das vernachlässigte Gebilde dem Protoplasmakörper des Elementarorganismus als gleichwerthig erscheinen lassen.
In der Geschichte des Zellenkerns lässt sich eine gewisse Analogie mit der Geschichte der Zellentheorie nicht verkennen. Auch den Zellenkern fasste man zuerst als ein Bläschen, ja geradezu als eine kleinere Zelle in der grösseren Zelle auf. Wie man dann in der Zelle das Protoplasma als die lebensthätige Substanz beurtheilen lernte, so sah man später auch beim Kern ein, dass die Form des Bläschens etwas Nebensächliches sei, dass die Lebensthätigkeit des Kerns vielmehr an gewisse Substanzen gebunden ist, die im Kernraum enthalten sind und uns in sehr verschiedener Anordnung im ruhenden und thätigen Zustand entgegentreten können.
Richard Hertwig (II. 18) hat diesen Gesichtspunkt in einer kleinen Abhandlung „Beiträge zu einer einheitlichen Auffassung der verschiedenen Kernformen“ zuerst klar ausgesprochen in den Worten: „Als den wichtigsten Punkt für eine einheitliche Beurtheilung der verschiedenen Kernformen muss ich gleich am Anfang meiner Betrachtungen hervorheben, dass sich bei allen Kernen eine gewisse stoffliche Uebereinstimmung erkennen lässt. Ob wir nun Zellkerne von Thieren, Pflanzen oder Protisten untersuchen mögen, stets finden wir, dass sie mehr oder minder von einer Substanz gebildet werden, welche ich im Anschluss an frühere Autoren als „Kernsubstanz“ (Nucleïn) bezeichnen werde. Von der Charakteristik dieser Substanz müssen wir ausgehen, ebenso wie derjenige, welcher das Wesentliche der Zelle schildern will, zunächst mit der Zellsubstanz oder dem Protoplasma beginnen muss.“
Wir definiren daher jetzt den Kern nicht mehr im Sinne von Schleiden und Schwann als ein kleines Bläschen in der Zelle, sondern als ein vom Protoplasma unterschiedenes und in gewissem Grade abgesondertes Quantum eigenthümlicher Kernsubstanzen, welche in sehr verschiedenartigen Formzuständen sowohl im ruhenden, als auch im activen Zustand bei der Theilung auftreten können.
Wir betrachten nach einander die Form, die Grösse und die Zahl der Kerne in einer Zelle, alsdann die im Kern enthaltenen Substanzen und ihre verschiedenartige Anordnungsweise (die Kernstructur).
a) Form, Grösse und Zahl der Kerne.
Gewöhnlich erscheint uns der Kern in pflanzlichen und thierischen Zellen als ein mitten in der Zelle gelegener, kugeliger oder ovaler Körper (Fig. 1, 2, 6, 16). Da derselbe häufig reicher an Flüssigkeit ist, als das Protoplasma, lässt er sich von letzterem auch in dem lebenden Object als ein heller, matt contourirter Fleck, als ein Bläschen oder als Vacuole unterscheiden. Das ist aber nicht immer der Fall. An vielen Objecten, Lymphkörperchen, Zellen der Hornhaut, Epithelzellen der Kiemenblättchen von Salamanderlarven ist der Kern im lebenden Zustand nicht zu beobachten, wird aber sofort beim Absterben der Zelle oder bei Zusatz von destillirtem Wasser oder von verdünnten Säuren in Folge eintretender Gerinnung deutlich.
Bei manchen Zellarten und niederen Organismen bietet uns der Kern sehr abweichende Formen dar. Bald bildet er ein Hufeisen (manche Infusorien), bald einen langen, mehr oder minder gewundenen Strang (Vorticellen), bald ist er ein reich verästelter Körper, der die Zelle nach den verschiedensten Richtungen durchsetzt (Fig. 18 B u. C). Letztere Kernform kommt namentlich in den grossen Drüsenzellen vieler Insecten vor (in den Malpighi’schen Röhren, Spinn- und Speicheldrüsen etc.), ebenso in Drüsenzellen von Phronima, einer Crustacee.
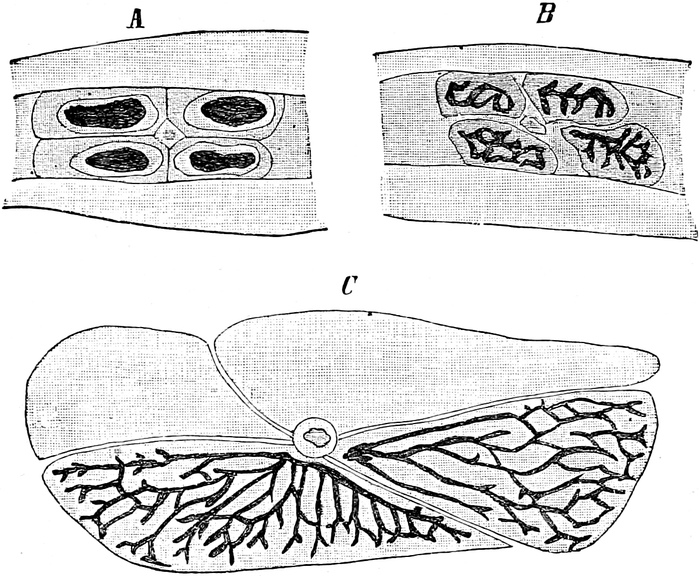
Fig. 18.
Nach P
AUL
M
AYER
. Aus K
ORSCHELT
Fig. 12.
A
Ein Stück vom siebenten Bein einer jungen Phronima von 5 mm Länge. Vergr. 90.
B
Ein Stück des sechsten Beines einer halb erwachsenen Phronimella. Vergr. 90.
C
Eine Zellgruppe der Drüse im sechsten Bein von Phronimella. Nur in zwei Zellen ist der Kern eingezeichnet. Vergr. 90.
Die Grösse, welche ein Kern erreicht, steht in der Regel in einer gewissen Proportion zu der Grösse des ihn umhüllenden Protoplasmakörpers. Je grösser dieser ist, um so grösser ist der Kern. So finden sich in den grossen Ganglienzellen der Spinalknoten auffallend grosse, bläschenförmige Kerne. Ganz riesige Dimensionen aber erreichen dieselben in unreifen Eizellen und zwar in einem ihrer Grösse entsprechenden Maassstabe. Aus unreifen Eiern von Fischen, Amphibien und Reptilien lassen sich in Folge dessen die Kerne mit Nadeln leicht herauspräpariren und vollständig isoliren, wobei sie mit unbewaffnetem Auge als kleine Punkte erkennbar sind. Doch sind Ausnahmen von der Regel hervorzuheben. Denn dieselben Eier, welche im unreifen Zustand so ansehnliche Kerne beherbergen, enthalten im reifen und im befruchteten Zustand einen so winzigen Kern, dass sein Nachweis mit den allergrössten Schwierigkeiten verbunden ist.
Niederste Organismen besitzen, wenn sie von beträchtlicher Grösse sind, häufig einen einzigen grossen Kern; derselbe erreicht ganz riesige Dimensionen im Binnenbläschen vieler Radiolarien.
Was die Zahlenverhältnisse endlich betrifft, so ist bei Pflanzen und Thieren das gewöhnliche, dass in jeder Zelle nur ein Kern vorhanden ist. Einzelne Elementartheile machen davon eine Ausnahme. Leberzellen zeigen häufig 2 Kerne; bis 100 Kerne und mehr sind in den Riesenzellen des Knochenmarks, in den Osteoklasten, in Zellen mancher krankhafter Geschwülste eingeschlossen. Durch Vielkernigkeit zeichnen sich, wie Schmitz entdeckt hat, die Zellen vieler Pilze und mancher niederer Pflanzen aus, der Cladophoren (Fig. 19) und Siphoneen (Botrydium, Vaucheria, Caulerpa etc.).
Vielkernig sind zahlreiche niederste Organismen, wie die Myxomyceten, viele Mono- und Polythalamien, Radiolarien und Infusorien (Opalina ranarum). Die Kerne sind hier häufig so klein und in so grosser Anzahl im Protoplasma vertheilt, dass ihr Nachweis erst in jüngster Zeit bei Anwendung der vervollkommneten Färbemethoden geglückt ist. (Myxomyceten).
b) Die Kernsubstanzen.
In stofflicher Hinsicht ist der Zellenkern ein ziemlich zusammengesetztes Gebilde. Stets lassen sich in ihm 2, sehr häufig aber 3 bis 4 chemisch definirbare und mikroskopisch unterscheidbare Proteinsubstanzen nachweisen. Die beiden stets wiederkehrenden Substanzen sind: Nuclein oder Chromatin, und Paranuclein oder Pyrenin; zu ihnen sind meist noch hinzugesellt: Linin, Kernsaft und Amphipyrenin.
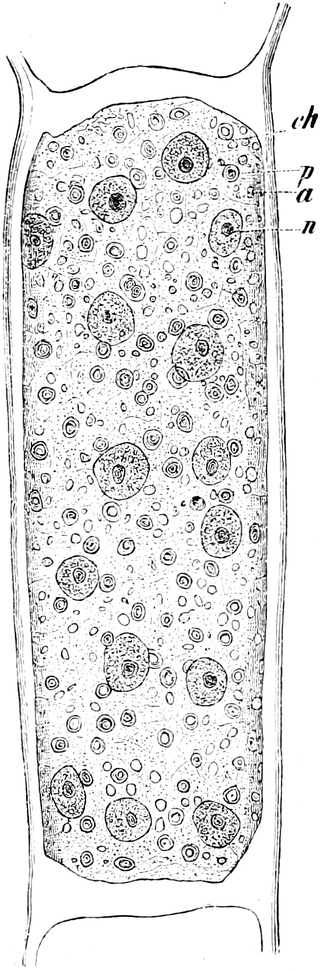
Fig. 19. Cladophora glomerata. Eine Zelle des Fadens nach einem Chromsäure-Carmin-Präparat.
Nach S
TRASBURGER
, Bot. Prakticum Fig. 121.
n
Zellkerne,
ch
Chromatophoren,
p
Amylumheerde,
a
Stärkekörnchen. Vergr. 540.
Das Nuclein oder Chromatin ist die für den Kern am meisten charakteristische und gewöhnlich an Masse überwiegende Proteinsubstanz. In frischem Zustand ähnlich wie körnchenfreies Protoplasma aussehend, unterscheidet es sich von demselben in sehr prägnanter Weise namentlich durch sein Verhalten bestimmten Farbstoffen gegenüber. Nachdem es durch Reagentien zur Gerinnung gebracht ist, speichert es, wie zuerst durch Gerlach entdeckt worden ist, Farbstoffe aus zweckmässig hergestellten Lösungen (Lösungen von Carmin, Haematoxylin, Anilinfarben) in sich auf. Mehr noch als im ruhenden Zustand des Kerns ist dies in den Vorstadien zu seiner Theilung und während der Theilung selbst der Fall. Ob es sich hierbei um chemische oder um physikalische Vorgänge handelt, ist zur Zeit noch nicht festgestellt. Die Kunst des Färbens oder Tingirens ist jetzt schon so weit ausgebildet worden, dass es leicht gelingt das Nuclein des Kerns allein durch irgend eine Färbung scharf hervorzuheben, während der übrige Inhalt des Kerns und der Protoplasmakörper entweder vollständig farblos bleiben oder nur sehr wenig mitgefärbt sind. Auf diese Weise gelingt es, selbst Nucleintheilchen, die nur die Grösse eines Bacteriums etwa besitzen, in relativ grossen Protoplasmakörpern kenntlich zu machen, wie zum Beispiel die winzigen Köpfe von Samenfäden oder die Chromosomen der Richtungsspindel mitten im Körper grosser Eizellen.
Von grosser theoretischer Tragweite dürfte vielleicht einmal die von Fol. (II. 13) betonte Thatsache werden, „dass die Kernfärbung aus neutralen Farbstoffauflösungen stets diejenige Nüance aufweist, welche die betreffende Farbe beim Zusatz geringer Mengen eines basisch reagirenden Stoffes annimmt. So geht z. B. der rothe Alauncarmin in die Lilafarbe über, wenn die Lösung schwach alkalisch gemacht wird, das violette Böhmer’sche Haematoxylin wird blau, das rothe Ribesin blaugrünlich, der rothe Farbstoff des Rothkohles verwandelt sich in grün. Dementsprechend sehen wir denn auch, dass in neutralen Auflösungen dieser Stoffe gefärbte Gewebskerne eine mit der letzteren übereinstimmende Tinction aufweisen, also lila in Alauncarmin, blau in Haematoxylin, hellblau in Ribesin, grün im Rothkohlfarbstoff. Der färbbare Theil des Zellenkerns (das Nuclein) verhält sich im allgemeinen dem an ihn gebundenen Farbstoffe gegenüber wie ein schwach alkalischer Körper.“ (Fol.)
Auch sonst zeigt das Nuclein in chemischer Hinsicht charakteristische Reactionen, die bei der Conservirung der Kernstructuren im Auge zu behalten sind. (Schwarz II. 37, Zacharias II. 43–45.) Es quillt in destillirtem Wasser, desgleichen auch in sehr verdünnten alkalischen Lösungen sowie in zwei- und mehrprocentigen Lösungen von Kochsalz, schwefelsaurer Magnesia, Monokaliumphosphat und Kalkwasser. Bei Anwendung von 10 bis 20% Lösungen der genannten Salze geht es unter Quellung allmählich ganz in Lösung über. Desgleichen wird es in einem Gemisch von Ferrocyankalium + Essigsäure oder in concentrirter Salzsäure, oder wenn es der Trypsinverdauung unterworfen wird, vollständig aufgelöst. In Essigsäure in Concentrationen von 1–50% wird es ziemlich unverändert zur Fällung gebracht, wobei es sich durch stärkere Lichtbrechung und eigenartigen Glanz vom Protoplasma mitunter sehr scharf abhebt. Im Kernraum tritt es uns (Fig. 20) bald in Form isolirter Körnchen (A), oder als feines Netzwerk (B C) oder in Fäden (D) entgegen.
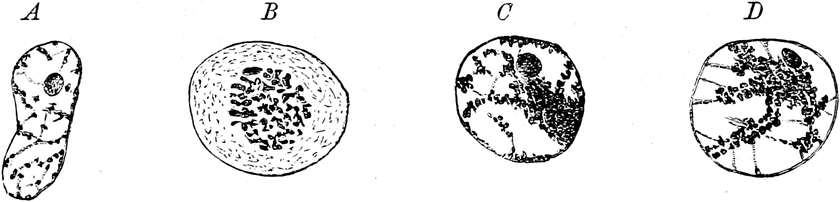
Fig. 20.
A
Ruhender Kern einer Ursamenzelle von Ascaris megalocephala bivalens.
B
Kern einer Samenmutterzelle aus dem Anfang der Wachsthumszone von Ascaris megalocephala bivalens.
C
Ruhender Kern einer Samenmutterzelle aus der Wachsthumszone von Ascaris megalocephala bivalens.
D
Bläschenförmiger Kern einer Samenmutterzelle von Ascaris megalocephala bivalens am Anfang der Theilzone in Vorbereitung zur Theilung.
Das Nuclein hat Miescher (II. 49) aus Eiterkörperchen und aus thierischen Samenfäden, in deren Köpfen es enthalten ist, rein darzustellen versucht. In seiner Zusammensetzung spielt Phosphorsäure, die wenigstens zu 3% vertreten ist, eine wichtige Rolle. Manches spricht dafür, dass das Nuclein des Kerns „eine Vereinigung eines eiweissartigen Körpers mit einem organischen, Phosphorsäure enthaltenden Atomcomplex darstellt“. (Kossel II. 35.) Letzteren hat man als Nucleinsäure bezeichnet und Miescher hat für dieselbe die Formel C29H49N9P3O22 berechnet.
„Bei längerer Einwirkung von verdünnten Säuren oder Alkalien, selbst schon beim Aufbewahren im feuchten Zustand werden die Nucleine zerlegt unter Bildung von Eiweiss und stickstoffreichen Basen, daneben spaltet sich Phosphorsäure ab. Die beiden letzteren Spaltungsproducte bilden sich auch aus den Nucleinsäuren. Die Basen sind: Adenin, Hypoxanthin, Guanin, Xanthin“.
Das Paranuclein oder Pyrenin ist eine Proteinsubstanz, welche wohl in keinem Kern fehlt, doch ist seine Rolle für die Lebensprocesse des Kerns noch unklar und viel weniger gut als die des Nucleins erkannt. Es kommt im Kern in der Form kleiner Kügelchen vor, die als echte Nucleolen oder Kernkörperchen beschrieben werden (Fig. 20).
Allen Mitteln, in welchen die Nucleinsubstanzen quellen, destillirtem Wasser, sehr dünnen alkalischen Lösungen, Lösungen aus Kochsalz, schwefelsaurer Magnesia, Monokaliumphosphat, Kalkwasser, leisten die Körperchen aus Paranuclein Widerstand. Während die aus Nuclein bestehenden Structuren schwinden, sind in dem Kernraum, der ein homogenes Aussehen gewonnen hat, die aus Paranuclein bestehenden Gebilde oft mit grosser Deutlichkeit, stets besser als im lebenden Kern, zu erkennen. Hieraus erklärt es sich, dass bereits den älteren Histologen, Schleiden und Schwann, die gewöhnlich die Gewebe nach Zusatz von Wasser untersuchten, die Kernkörperchen wohl bekannt waren.
Ein sehr brauchbares Mittel, um sie sichtbar zu machen, ist die Osmiumsäure, durch welche sie besonders stark lichtbrechend werden, während die Nucleinstructuren verblassen.
Bei Einwirkung von 1 bis 50% Essigsäure verhalten sich Paranuclein und Nuclein gerade entgegengesetzt. Während letzteres zur Gerinnung gebracht wird und einen starken Glanz erhält, quellen die Kernkörper mehr oder minder bedeutend auf und können ganz durchsichtig werden, ohne indessen in Lösung überzugehen; denn beim Auswaschen der Essigsäure werden sie wieder unter Schrumpfungserscheinungen besser sichtbar.
Hervorzuheben ist ferner im Gegensatz zum Nuclein die Unlöslichkeit des Paranuclein in 20% Kochsalz, in gesättigten Lösungen von schwefelsaurer Magnesia, 1% und 5% Monokaliumphosphat, Ferrocyankalium plus Essigsäure, schwefelsaurem Kupfer; endlich ist es in Trypsin sehr schwer verdaubar.
Auch bei Behandlung mit Farbstoffen zeigt sich zwischen Nuclein und Paranuclein ein gewisses gegensätzliches Verhalten. Wie Zacharias bemerkt und ich aus eigener Erfahrung im Allgemeinen bestätigen kann, färben sich Nucleinkörper besonders scharf und intensiv in saueren Farbstofflösungen (Essigcarmin, Methylessigsäure), während die Paranucleinkörper fast farblos bleiben. Umgekehrt tingiren sich letztere besser in ammoniakalischen Farbstofflösungen, wie in Ammoniakcarmin etc. Manche Farbstoffe haben zum Paranuclein eine grössere Verwandtschaft, wie Eosin, Säurefuchsin etc. Mit Berücksichtigung dieses Umstandes ist es möglich, bei gleichzeitiger Anwendung zweier Farbstoffe Doppelfärbung zu erzielen der Art, dass die Nucleinkörper in einer anderen Farbe erscheinen, wie die Paranucleinkörper (Fuchsin und Solidgrün, Haematoxylin und Eosin etc., Biondi’sches Gemisch); da indessen das Wesen des Färbungsprocesses selbst uns noch wenig verständlich ist, ist es auf diesem Gebiet zur Zeit nicht möglich, durchgreifende Regeln über die Tingirbarkeit der beiden Kernsubstanzen aufzustellen.
Nuclein und Paranuclein betrachte ich als die wesentlichen Substanzen des Kerns, auf deren Vorhandensein seine physiologischen Leistungen in erster Linie beruhen. Beide scheinen mir in irgendwelchen Beziehungen zu einander zu stehen. Flemming (II. 10) spricht die Vermuthung aus, dass die Kernkörperchen besondere Reproductions- und Ansammlungsstellen des Nucleins sind und vielleicht eine chemische Vorstufe desselben darstellen. Zu einer Entscheidung dieser Fragen reicht das vorhandene Beobachtungsmaterial nicht aus.
Von mehr nebensächlicher Bedeutung scheinen mir 3 andere im Kern noch unterscheidbare Substanzen zu sein, welche vielleicht überhaupt nicht stets vorhanden sind, das Linin, der Kernsaft, und das Amphipyrenin.
Als Linin bezeichnet Schwarz (II. 37) den Stoff von Fäden, welche in vielen Fällen in dem Kernraum ein Netz- oder Gerüstwerk bilden, sich nicht in den gewöhnlichen Kernfärbungsmitteln tingiren lassen und sich hierdurch sowie auch in ihren chemischen Reactionen wesentlich vom Nuclein unterscheiden, das ihnen meist in Form von Körnchen und Brocken aufgelagert ist. (Fig. 20 A und C.) In mancher Hinsicht ähnelt es dem Plastin des Zellkörpers, welchen Namen ihm denn auch geradezu Zacharias gegeben hat.
Der Kernsaft ist bald nur spärlich, bald reichlicher vorhanden; er füllt die Lücken zwischen den aus Nuclein, Linin und Paranuclein bestehenden Structuren aus. Er lässt sich dem in einem vacuoligen Protoplasma enthaltenen Zellsaft vergleichen und spielt wohl dieselbe Rolle für die Ernährung der Kernsubstanzen, wie dieser für die Ernährung des Protoplasma. Bei Einwirkung von manchen Reagentien, wie absolutem Alkohol, Chromsäure etc., treten im Kernsaft feinkörnige Niederschläge auf, welche als Kunstproducte nicht mit normalen Structuren zu verwechseln sind. Es müssen daher in ihm verschiedenartige Stoffe, darunter vielleicht auch Albuminate, gelöst sein, welche Zacharias mit einem wohl entbehrlichen Wort als Paralinin zusammenfasst.
Unter Amphipyrenin endlich versteht Zacharias die Substanz der Membran, durch welche der Kernraum gegen das Protoplasma, wie dieses durch die Zellhaut nach Aussen abgegrenzt ist. Das Vorhandensein einer Kernmembran ist in vielen Fällen ebenso schwer festzustellen, wie der Streit zu entscheiden ist, ob manche Zellen von einer Membran umhüllt sind oder nicht. Am leichtesten ist sie an den grossen Keimbläschen vieler Eier, wie z. B. von Amphibien nachzuweisen, wo sie zugleich eine nicht unbeträchtliche Festigkeit besitzt. In Folge dessen gelingt es leicht, aus unreifen Eiern das Keimbläschen vollständig unversehrt mit der Nadel zu isoliren. Man kann dann mit der Nadel auch die Kernmembran zerreissen und den von ihr eingeschlossenen Inhalt zum Ausfliessen und zur Vertheilung in der Untersuchungsflüssigkeit bringen. Ebenso sicher scheint mir aber in anderen Fällen eine eigene Kernmembran zu fehlen, so dass Kernsubstanz und Protoplasma unmittelbar an einander grenzen. So wurde sie z. B. von Flemming (II. 10) in den Blutzellen von Amphibien und ebenso von mir in den Kernen von Samenmutterzellen der Nematoden auf einem bestimmten Stadium (Fig. 20 B) vermisst.
Wie für den Protoplasmakörper, hat Altmann auch für den Kern eine Zusammensetzung aus Granula mittelst einer eigenartigen Färbung durch Cyanin nachzuweisen versucht. Es ist ihm hierdurch gelungen, den Saft, welcher die Lücken im Kernnetz ausfüllt, intensiv zu färben und so Körner darzustellen, während das Kernnetz ungefärbt bleibt und als Intergranularsubstanz bezeichnet wird. Altmann hat auf diese Weise den negativen Abdruck von der Kernstructur erhalten, wie sie sich bei Anwendung der gebräuchlichen Kernfarbstoffe durch Färbung des Kernnetzes ausprägt. Indem er die Granula als Hauptbestandtheil des Kerns betrachtet, kommt er zu einer entgegengesetzten Auffassung von der jetzt herrschenden Meinung von der Bedeutung der Kernsubstanzen, nach welcher der Kernsaft als minderwerthig im Vergleich zu dem Nuclein und Paranuclein erscheint.
c) Die Kernstructur. Beispiele für die verschiedene Beschaffenheit derselben.
Die oben aufgeführten Substanzen, von denen wenigstens das Nuclein und Paranuclein niemals fehlen, erscheinen in den Kernen der verschiedensten pflanzlichen und thierischen Zellen unter sehr mannigfachen Formzuständen; namentlich gilt dies von dem Nuclein, das man bald in feinen Körnchen, bald in Fäden, bald in Form grösserer Körper, bald als ein Gerüst, bald als Wabenwerk im Kernraum verbreitet sieht. Dabei kann in verschiedenen Lebensphasen einer Zelle die eine Structur in die andere übergehen.
Bei einer Definition des Kerns ist daher von der wechselnden Form ganz abzusehen und es ist der Schwerpunkt, wie bei der Definition der Zelle in das Protoplasma, so bei dem Kern in die in ihm enthaltene wirksame Substanz zu legen. „Der Kern ist ein vom Protoplasma unterschiedenes und in gewissem Grade abgesondertes Quantum eigenthümlicher Kernsubstanzen.“ Deswegen sollte bei allen Beschreibungen des Kerns auf die substanzielle Beschaffenheit seiner Structurtheile mehr, als es häufig geschieht, geachtet werden.
Um eine Vorstellung von der Mannigfaltigkeit, welche die innere Structur des ruhenden Kerns darbietet, zu geben, soll wieder eine Auswahl einiger prägnanter Beispiele dienen.
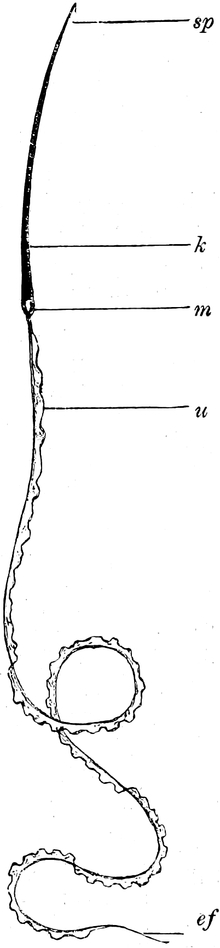
Fig. 21. Samenfaden von Salamandra maculata.
k
Kopf.
m.
Mittelstück.
ef
Endfaden.
sp.
Spitze.
u
undulirende Membran.
Unstreitig die einfachste Structur — wenn wir von den später zu erörternden molekularen Verhältnissen absehen — zeigen uns die Kerne der reifen Samenzellen. Wenn die Samenzellen, wie gewöhnlich, eine fadenförmige Gestalt, welche zum Einbohren in die Eizelle am geeignetsten ist, angenommen haben, bilden die Kerne das vorderste Ende des Fadens oder seinen Kopf. Bei Salamandra maculata hat der Kopf die Form eines in eine scharfe Spitze auslaufenden Schwertes (Fig. 21 k); er besteht aus dichtem Nuclein, das auch bei stärkster Vergrösserung einen homogenen Eindruck macht. An den Kopf grenzt ein kurzer cylindrischer, gleichfalls homogen aussehender Körper, das sogenannte Mittelstück (m), welches die Reaction des Paranucleins darbietet. Es ist daher wahrscheinlich mit zum Kerntheil des Samenfadens hinzuzurechnen, was indessen durch Verfolgung seiner Entwicklung erst noch festgestellt werden muss.
Auch in Samenelementen, welche die Form einer Zelle beibehalten haben, erscheint der Kern als ein compacter, kugeliger Nucleinkörper; so bei Ascaris megalocephala (Fig. 22), dessen Samenelemente im unreifen Zustande die Form einer ziemlich grossen, runden Zelle haben und später bei vollständiger Reife die Form eines Fingerhutes annehmen.
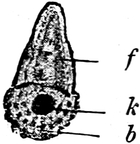
Fig. 22. Samenkörper von Ascaris megalocephala.
Nach
VAN
B
ENEDEN
. Aus O. H
ERTWIG
, Entwgesch. Fig. 21.
k
Kern.
b
Basis des Kegels, mit welchem die Anheftung am Ei erfolgt.
f
Fettglänzende Substanz.
Der einfache Zustand, in welchem uns die Kerne der Samenzellen, gewissermaassen nur aus activen Kernsubstanzen zusammengesetzt und frei von anderen Beimischungen, entgegentreten, muss den naturgemässen Ausgangspunkt für eine richtige Beurtheilung der übrigen Kernformen abgeben. Es lassen sich dann nämlich die verschiedenen Structuren, die man bei pflanzlichen und thierischen Kernen wahrnimmt, hauptsächlich auf das eine Moment zurückführen, dass die activen Kernsubstanzen eine grosse Neigung haben, Flüssigkeit und in dieser gelöste Stoffe in sich aufzunehmen und in Lücken abzuscheiden meist in solchem Maasse, dass der ganze Kern das Aussehen eines in Protoplasma eingeschlossenen Bläschens gewinnt.
Es tritt also bei ihnen im wesentlichen ein ähnlicher Vorgang ein, wie beim Protoplasma, in welchem sich Zellsaft in Vacuolen oder grossen Safträumen ansammelt. In beiden Fällen werden wohl die Vorgänge die gleiche Bedeutung haben. Sie werden in Beziehung zum Stoffwechsel der Zelle und des Kernes stehen, indem in der Flüssigkeit Stoffe in Lösung enthalten sind, welche mit den activen Substanzen in Folge der grösseren Oberflächenentwicklung derselben in leichteren Austausch treten.
Der Vorgang der Saftaufnahme lässt sich direct beobachten, wenn nach der Befruchtung der Samenkern in der Eizelle in Function tritt. In manchen Fällen beginnt er dann allmählich auf das 10–20fache seiner ursprünglichen Grösse anzuschwellen, und zwar nicht durch Vermehrung seiner activen Substanz, deren Quantum genau das gleiche bleibt, sondern einzig und allein durch Aufnahme von flüssigen, gelösten Stoffen aus dem Dotter. In dem zu einem Bläschen umgebildeten Samenkern ist das Nuclein in feinen Fäden zu einem Netz ausgebreitet; ferner sind auch ein bis zwei Kügelchen aus Paranuclein (Nucleolen) anzutreffen. Ein ähnlicher Vorgang wiederholt sich bei jeder Kerntheilung während der Reconstruction der Tochterkerne.
Je nachdem nun der Kern eine geringere oder grössere Menge von Kernsaft aufgenommen, haben sich seine festen Substanzen, die oben als Linin und Nuclein chemisch näher charakterisirt wurden, bald zu einem feineren, bald gröberem Gerüstwerk angeordnet. Einen Einblick in verschiedene Modifikationen desselben geben uns die Fig. 23–26.
Figur 23 zeigt uns den Kern einer Cilioflagellate. Er besteht in ähnlicher Weise wie der Hauptkern der Infusorien aus einem sehr engmaschigen Nucleingerüst. Bütschli (II. 5) nennt seine Structur eine feinwabige; er lässt den Kern zusammengesetzt sein aus langgestreckten, drei- bis mehrseitigen Waben, die durch sehr feine Scheidewände von Nuclein getrennt sind und den wenig färbbaren Kernsaft umschliessen. Nach der Oberfläche zu sind die Waben gegen das Protoplasma ebenfalls durch eine feine Nucleinschicht abgeschlossen, während eine besondere Kernmembran fehlt. Die Kanten, in denen die Wabenwände zusammenstossen, sind säulenartig verdickt. Je nach der Seite, von der man den Kern erblickt, fällt in Folge der gestreckten Form der parallel gestellten Waben das Bild verschieden aus, wie durch Betrachtung der Figuren 23 A u. B leicht zu verstehen ist. Ein bis zwei Nucleolen sind in der Lücke nachzuweisen.
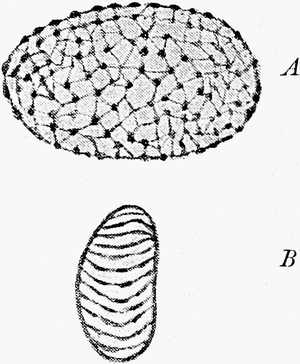
Fig. 23.
Fig. 24.
Fig. 23. Ein sehr deutlich feinwabiger Kern von Ceratium Tripos. Nach BÜTSCHLI Taf. 26, Fig. 14.
A In der Ventralansicht des Ceratiums. B In seitlicher Ansicht. Beide Abbildungen geben nur optische Durchschnitte.
Fig. 24. Kern einer Bindegewebszelle des Peritoneums einer Salamanderlarve mit in der Nähe gelegenen Centralkörperchen. Nach FLEMMING Fig. 4.
Figur 24 stellt das Kerngerüst von einer Bindegewebszelle einer Salamanderlarve dar. Dasselbe wird von einem ziemlich engen Netzwerk feinster Fäden gebildet. In ihm treten hie und da einige dickere Anschwellungen auf, welche den Farbstoff besonders zäh festhalten; sie pflegen namentlich an solchen Stellen vorzukommen, wo mehrere Balken zusammenstossen. Es sind dichtere Ansammlungen von Nuclein; sie können den aus Paranuclein gebildeten, wahren Nucleolen in ihrem Aeusseren sehr ähnlich sehen und sind daher, um sie von diesen zu unterscheiden, von Flemming als Netzknoten bezeichnet worden.
Die Kerne der verschiedenen thierischen Gewebe haben bald ein feineres, bald ein gröberes Gerüst. In letzterem Fall kann es zuweilen nur aus wenigen Strängen bestehen, so dass es „den Namen Gerüst oder Netz kaum verdient“. Im Allgemeinen haben, wie Flemming bemerkt, die Kerne junger, embryonaler und wachsender Gewebe dichtere Netze, als solche im gleichen erwachsenen Gewebe.
Meistentheils ist das Kerngerüst aus 2 verschiedenen Substanzen, aus Linin und aus Nuclein, aufgebaut, von denen bei den gewöhnlichen Kerntinctionen nur das letztere den Farbstoff aufnimmt und festhält. Beide Substanzen sind gewöhnlich so angeordnet, dass das Nuclein in gröberen und feineren Körnchen dem sich nicht färbenden Liningerüst gleichmässig auf- und eingelagert ist. In sehr feinmaschigen Gerüsten, wie Figur 24 ein solches darstellt, kann die Unterscheidung beider Substanzen sehr schwierig, ja sogar unmöglich werden. Leichter gelingt dieselbe bei dem gröberen Netzwerk der Figur 25, welche einen ruhenden Zellkern aus dem protoplasmatischen Wandbelag des Embryosackes von Fritillaria imperialis wiedergibt. Nach der Beschreibung von Strasburger sind die feinen Gerüstfäden im Allgemeinen nicht färbbar; sie bestehen also aus Linin. Ihnen sind kleinere und grössere sich färbende Nucleinkörner aufgelagert. Im Gerüst sieht man ausserdem eine Anzahl grösserer und kleinerer Nucleolen.
Sollte Jemand an der Existenz eines besonderen Liningerüstes zweifeln, so wird er sich von derselben am besten durch das Studium der Kerne von Samenmutterzellen des Pferdespulwurmes (Fig. 26) überzeugen können. In dem Vorstadium zur Theilung ist hier alles Nuclein in 8 hakenförmig gekrümmten Stäbchen enthalten, die in 2 Bündeln zusammenliegen. Sie werden im Kernraum gewissermaassen in der Schwebe erhalten, indem sich farblose Lininfäden sowohl zwischen ihnen ausspannen, als auch von ihnen sich zur Kernmembran begeben. Dass die Fäden keine durch Reagentien im Kernsaft hervorgerufene Gerinnsel sind, lässt sich aus ihrer überaus regelmässigen Anordnung erschliessen. Ebenso lehrt ihre chemische Reaction und ihr Verhalten beim Theilungsprocess, dass sie vom Nuclein und Paranuclein etwas wesentlich Verschiedenes sind.
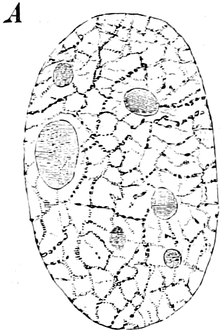
Fig. 25.
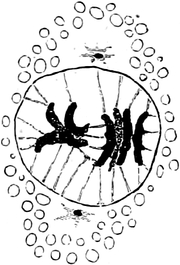
Fig. 26.
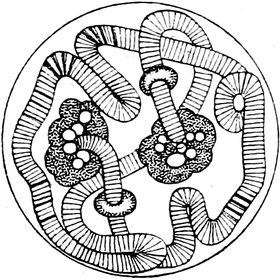
Fig. 27.
Fig. 25. Fritillaria imperialis. Ein ruhender Zellkern. Nach STRASBURGER Fig. 191 A.
Fig. 26. In Vorbereitung zur Theilung befindlicher Kern von Ascaris megaloc. bivalens mit 8 in 2 Gruppen angeordneten Kernsegmenten und den 2 Polkörperchen. HERTWIG II. 19b, Taf. II, Fig. 18.
Fig. 27. Structur des Kerns einer Zelle aus der Speicheldrüse von Chironomus. Nach BALBIANI, Zoolog. Anzeiger 1881, Fig. 2.
Nicht immer ist übrigens das Nuclein in einem Gerüst ausgebreitet. So ist zum Beispiel in den grossen, bläschenförmigen Kernen von Chironomuslarven (Fig. 27), wie Balbiani (II. 3) gefunden hat, ein einziger dicker Kernfaden eingeschlossen; derselbe ist in verschiedenen Windungen zusammengelegt und lässt im gefärbten Präparate eine regelmässige Aufeinanderfolge tingirter und nicht tingirter Scheiben erkennen, was Strasburger (II. 41) auch von einigen pflanzlichen Objecten berichtet. Die beiden Enden des Fadens grenzen an 2 Nucleolen an.
In anderen Fällen wieder ist die Hauptmasse des Nucleins zu einem grösseren, kugligen Körper concentrirt, der wie ein Nucleolus aussieht, sich aber substantiell von den oben beschriebenen echten Nucleolen, die Paranuclein enthalten (siehe Seite 36), unterscheidet. Um Verwechslungen vorzubeugen, empfiehlt es sich, solche Gebilde als Nucleinkörper zu bezeichnen. Als Beispiel hierfür sei der Kern von Spirogyra aufgeführt, mit welchem die Kerne vieler niedriger Organismen im Bau übereinstimmen. Derselbe stellt ein Bläschen dar, das sich vom Protoplasma durch eine feine Membran abgrenzt und ein feines Kerngerüst enthält. Da dieses den Farbstoff bei Tinctionen nicht festhält, besteht es wohl vorwiegend aus Linin, dem nur wenige Nucleinkörnchen aufgelagert sind. Im Gerüst liegt ein grosser Nucleinkörper, der zuweilen auch in zwei kleinere zerlegt ist. Dass er hauptsächlich aus Nuclein besteht, geht aus der Art seiner Färbung, vor allen Dingen aber daraus hervor, dass seine Substanz bei der Kerntheilung in Körnchen zerfällt und die Kernsegmente liefert.
Aehnliche Nucleinkörper, die in der Literatur gewöhnlich auch unter dem Namen der Nucleolen gehen, spielen in der Structur der Keimbläschen thierischer Eier eine grosse Rolle. Ueberhaupt weichen die Keimbläschen in ihrem Bau von gewöhnlichen Gewebskernen nach mancher Richtung ab, wie die Figuren 28–30 lehren.
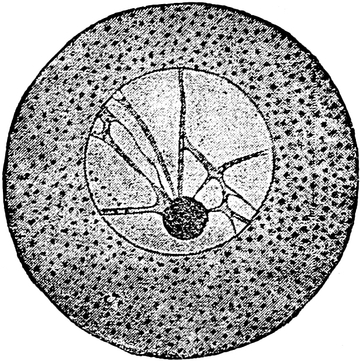
Fig. 28.
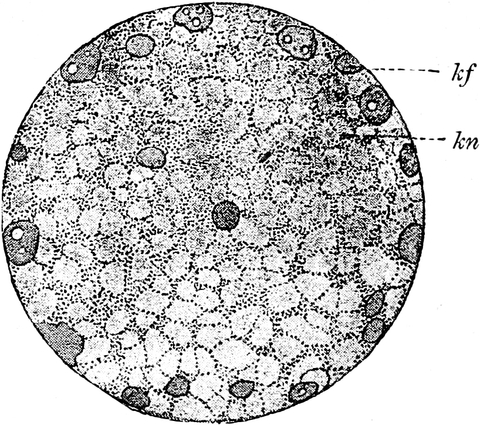
Fig. 29.
Fig. 28. Unreifes Ei aus dem Eierstock eines Echinoderms. Das grosse Keimbläschen zeigt in einem Netzwerk von Fäden, dem Kernnetz, einen Keimfleck. O. HERTWIG, Entwicklungsgesch. Fig. 1.
Fig. 29. Keimbläschen eines noch unreifen, kleinen Froscheies. Dasselbe zeigt in einem dichten Kernnetz (kn) sehr zahlreiche, meist wandständige Keimflecke (kf); m Kernmembran. O. HERTWIG, Entwicklungsgesch. Fig. 2.
Figur 28, das unreife Ei eines Seeigels, lässt schon, wenn es im lebenden Zustand untersucht wird, ein sehr grobes Netzwerk einzelner, ziemlich dicker Fäden unterscheiden. Diese bestehen, ihrem mikrochemischen Verhalten nach, hauptsächlich aus Linin. Die färbbare Substanz ist fast ausschliesslich in einem einzigen, grossen, kugeligen Körper, dem „Keimfleck“, aufgespeichert, der in einem Knotenpunkt des Gerüstes liegt, in welchem die meisten Lininfäden zusammentreffen.
In den Riesen-Keimbläschen, durch welche sich die grossen, dotterreichen Eier der Fische, Amphibien und Reptilien auszeichnen, nimmt die Zahl der Keimflecke während des Wachsthums der Zelle ausserordentlich zu — ob durch Theilung oder in einer anderen Weise, ist noch nicht genau ermittelt — und kann sich schliesslich auf einige Hunderte belaufen. Die Lage der Keimflecke ist zu verschiedenen Zeiten einem Wechsel unterworfen, meist liegen sie aber an der Oberfläche des Keimbläschens und sind an der Membran desselben in gleichmässigen Abständen vertheilt, wie die nebenstehende Abbildung (Fig. 29) eines Kerns aus einem noch unreifen und ziemlich kleinen Froschei zur Anschauung bringt.
Die Form der Keimflecke ist eine wechselnde; bald sind sie kugelig, namentlich wenn sie isolirt auftreten, bald oval, bald etwas in die Länge gezogen, bald in ihrer Mitte etwas eingeschnürt, bald unregelmässig contourirt. Wo sie zahlreich vorkommen, zeigen sie auch in ihrer Grösse erhebliche Verschiedenheiten. Häufig finden sich in ihrer eigenthümlich glänzenden, stark lichtbrechenden Substanz einzelne kleine Vacuolen, die mit Flüssigkeit erfüllt sind. Dass diese Vacuolen keine Kunstproducte sind, lehrt die Untersuchung lebender Eizellen. Doch können auch Vacuolen noch nachträglich beim Absterben der Eier sich bilden, und die vorhandenen Vacuolen sich vergrössern, wie Flemming hervorhebt. (II. 10 Seite 151.)
In ihren chemischen Eigenschaften sind die Keimflecke von den echten Nucleolen, die sich in den gewöhnlichen Kernfarbstoffen nicht tingiren und aus Paranuclein bestehen, verschieden. Auf der andern Seite ist aber auch nicht ausgemacht, ob ihre Substanz mit dem Nuclein des Kerngerüstes vollkommen identisch ist. Zur Zeit ist dieser Punkt trotz der zahlreichen, über den Kern erschienenen Untersuchungen noch nicht in befriedigender Weise aufgeklärt. Nur das Eine können wir als feststehend betrachten, dass die in den verschiedenen pflanzlichen und thierischen Kernen vorkommenden, mehr oder minder kugligen Körper, die in der Literatur meist schlechtweg als Nucleolen zusammengefasst werden, stoffliche Verschiedenheiten darbieten. Es ist dies durch die Untersuchungen von Flemming (II. 10), Carnoy (II. 8), von mir (II. 19a), von Zacharias (II. 45) und Anderen über allen Zweifel sichergestellt. Man sollte daher auch so verschiedene Dinge nicht mit demselben Namen benennen oder, wenn man blos wegen der Aehnlichkeit in der Form für alle kugligen Inhaltskörper des Kerns die allgemeine Bezeichnung Nucleolus oder Kernkörper beibehalten will, sollte man wenigstens im einzelnen Fall in einem Zusatz noch eine genaue Angabe über die chemische Natur des betreffenden Nucleolus hinzufügen. Ueberhaupt sollte man bei allen Untersuchungen des Kernes, wie schon früher bemerkt wurde, mehr Gewicht auf die chemische Beschaffenheit der einzelnen Inhaltsbestandtheile, als auf ihre formale Anordnung legen, welche jedenfalls der ersteren gegenüber das Nebensächlichere ist. Denn ein Gerüst, welches aus Lininfäden besteht, spielt im Kern eine ganz andere Rolle, als ein Gerüst, welches aus Nuclein oder gleichzeitig aus beiden Substanzen zusammengesetzt ist, und ebenso wird die Aufgabe der Nucleolen, je nachdem sie diesen oder jenen Stoff enthalten, eine verschiedene sein.
Ich schliesse diesen Excurs über die Nucleolen mit dem Hinweis, dass es sogar Keimflecke gibt, die sehr deutlich aus zwei verschiedenen Substanzen aufgebaut sind. Es ist dies Verhältniss zuerst durch Leydig bei lamellibranchiaten Mollusken beobachtet, dann durch Flemming (II. 10) an demselben Object und von mir (II. 19) noch in anderen Fällen genauer festgestellt worden. Ich lasse hier die Beschreibung des Thatbestandes, wie sie Flemming gibt, folgen.
Bei Cyclas cornea und bei Najaden findet sich im Keimbläschen ein Hauptnucleus ausser einigen wenigen Nebennucleolen. „Der erstere besteht aus 2 different beschaffenen Theilen: Fig. 30, einem kleineren, der bedeutend stärker lichtbrechend und stärker tingirbar ist, und einem grösseren, blasseren und schwächer chromatischen, der in Säure stärker quillt. Bei Anodonta hängen die beiden Theile zusammen, bei Unio sind sie vielfach nur mit einander in Berührung oder liegen selbst getrennt. Die kleineren Nebennucleolen, die hier in den Balken des Kerngerüstes lagern, zeigen dieselbe Lichtbrechung, Quellbarkeit und Tingirbarkeit, wie der grosse Theil des Hauptnucleolus. Bei Wasserzusatz verschwindet dieser Haupttheil und die Nebennucleolen nebst den Gerüststrängen; es bleibt der kleine, stark chromatische Theil des Hauptnucleolus, indem er dabei noch verschärft wird und etwas schrumpft und einen scharf abgesetzten Contour bekommt. Zusatz von starker Essigsäure (5% oder mehr) lässt den grösseren, blasseren Theil des Hauptnucleolus rasch aufquellen und verschwinden, während der kleine, glänzende zwar auch etwas quillt, aber erhalten bleibt.“ „Bei Anwendung von Kerntinctionen färbt sich zwar der starkbrechende Theil der Nucleolen besonders intensiv, aber in erheblichem Grade auch der andere Theil und die Nebennucleolen.“ „Solche Differenzirung der Hauptnucleolen in zwei Theile kommt bei Eizellen vieler Thiere vor. Bei Dreissena polymorpha ist der stark lichtbrechende und chromatische Theil als Hohlkappe um den blasseren herumgelagert.“
Fig. 30.
Nach F
LEMMING
Fig. E
1
. S. 104.
a
Kern eines Eierstockseies von Unio frisch aus der Zelle getreten in Ovarialflüssigkeit. Zweibuckliger Nucleolus. Geringe Theile der Kerngerüste sichtbar. α Ein solcher Kern nach Zufliessen von Essigsäure 5%. Gerüststränge sind aufgetreten, der grössere blassere Theil des Hauptnucleolus und die Nebennucleolen sind in gleichem Grade gequollen und erblasst; der kleinere Haupttheil des grossen Nucleolus ist ebenfalls, aber schwächer gequollen.
b
Nucleolus eines Eies von Tichogonia polymorpha; der glänzende Haupttheil sitzt als Kappe auf dem grösseren, blassen.
β Optisches Durchschnittsbild desselben, schematisch.
Ich selbst (II. 19) habe die Zusammensetzung des Keimflecks aus zwei Substanzen ausser bei Anodonta auch bei Helix, bei Tellina und bei Asteracanthion beobachtet. Letzteres Object (Fig. 31) wird dadurch von besonderem Interesse, dass die Sonderung in zwei Substanzen (pn, nn) erst zu der Zeit deutlich wahrnehmbar wird, wo sich das Keimbläschen aufzulösen und aus seinen Inhaltsbestandtheilen die Polspindel zu bilden beginnt.
Endlich ist bei der Beschreibung der Structur des ruhenden Kernes noch auf einen wichtigen Punkt die Aufmerksamkeit zu lenken. Je nach dem Alter oder der Entwicklungsstufe einer Zelle kann der ruhende Kern in allen seinen einzelnen Theilen, im Aussehen seines Kerngerüstes, in der Zahl, Grösse und Beschaffenheit seiner „Nucleolen“ erhebliche Veränderungen erleiden. So ist, wie Flemming (II. 10) bemerkt, „am jungen Eierstocksei der Lamellibranchiaten die Zweitheiligkeit des grossen Kernkörpers noch nicht zu finden, sie bildet sich erst am reifen heraus“. Ueberhaupt erfahren die Keimbläschen der Eier während ihres Wachsthums erhebliche Metamorphosen, die im Ganzen noch wenig untersucht und noch weniger in ihrer Bedeutung verstanden sind. Dasselbe gilt von den Kernen der Samenmutterzellen. Hier habe ich (II. 19b) die Formwandlungen an einem sehr geeigneten Object, an der Hodenröhre von Ascaris megalocephala, genauer zu verfolgen gesucht.
Fig. 31. Ausschnitt aus einem Ei von Asterias glacialis.
Derselbe zeigt die Rückbildung des Keimbläschens. Dieses beginnt zu schrumpfen, indem ein Protoplasmahöcker (
x
) mit einer Strahlung in sein Inneres eindringt und die Membran daselbst auflöst. Der Keimfleck (
kf
) ist noch deutlich, aber in zwei Substanzen, Nuclein (
nn
) und Paranuclein (
pn
), gesondert. O. H
ERTWIG
, Entwicklungsgesch. Fig. 12.
Wie in den Figuren 32 dargestellt ist, geht allmählich die Form A in B und diese wieder in C im Laufe der Samenentwicklung über. Die jüngsten Samenmutterzellen (B) haben membranlose Kerne mit einem dichten Nucleingerüst mit oberflächlich gelegenem Nucleolus; daraus ist bei etwas älteren Zellen (C) ein bläschenförmiger Kern mit deutlich ausgeprägter Membran hervorgegangen. Im Bläschen spannen sich durch den Kernsaft einzelne Lininfäden aus. Das Nuclein ist in ein oder zwei unregelmässigen Klumpen angehäuft, zwischen denen ein mehr oder minder kugeliger Nucleolus liegt. In noch nicht herangereiften Zellen ist das Nuclein meist an einer Stelle der Kernmembran als dichte Schicht angehäuft, während kleinere und grössere Körnchen auf der Oberfläche der Lininfäden aufliegen, die sich spärlich im Kernraum ausspannen. Aus diesem Zustand geht dann geraume Zeit vor der Theilung wieder das Nuclein in eine ausgesprochen fadige Anordnung über (D). In dem Lückenwerk des Gerüstes findet sich stets ein Nucleolus.
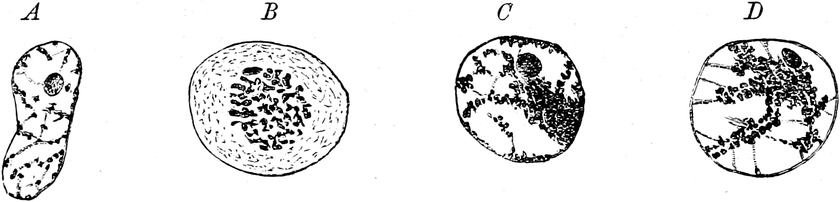
Fig. 32.
A
Ruhender Kern einer Ursamenzelle von Ascaris megalocephala bivalens.
B
Kern einer Samenmutterzelle aus dem Anfang der Wachsthumszone von Ascaris megalocephala bivalens.
C
Ruhender Kern einer Samenmutterzelle aus der Wachsthumszone von Ascaris megalocephala bivalens.
D
Bläschenförmiger Kern einer Samenmutterzelle von Ascaris megalocephala bivalens am Anfang der Theilzone in Vorbereitung zur Theilung.
III. Giebt es kernlose Elementarorganismen?
An die Beschreibung der chemischen und morphologischen Eigenschaften des Kerns lässt sich noch die wichtige Frage knüpfen, ob der Kern ein unentbehrlicher Bestandtheil jeder Zelle ist. Gibt es kernlose Elementarorganismen? Noch vor einer Reihe von Jahren war man mit einer Antwort auf diese Frage nicht verlegen. — Da man in Folge der Mangelhaftigkeit der älteren Untersuchungsmethoden bei vielen niederen Organismen keine Kerne gefunden hatte, nahm man die Existenz von zwei verschiedenen Arten von Elementartheilen an, von einfacheren, die nur aus einem Klümpchen von Protoplasma bestehen, und von zusammengesetzten, welche in ihrem Innern noch als besonderes Organ den Kern entwickelt haben. Die ersteren bezeichnete Haeckel (I. 10. II. 15) als Cytoden und ihre einfachsten, einzellebenden Formen als Moneren, die letzteren als Cellulae oder Cyten. Seitdem aber hat sich der Stand der Frage wesentlich verändert.
Dank den verbesserten optischen Hülfsmitteln und den vervollkommneten Färbungsmethoden ist die Existenz von Organismen ohne Kern sehr in Frage gezogen.
Bei sehr vielen niederen Pflanzen (Algen, Pilzen) und bei Protozoen, Vampyrellen, Polythalamien, Myxomyceten, die früher als Beweisobjecte für das Fehlen des Kerns gegolten hatten, gelingt es mit leichter Mühe, Kerne nachzuweisen. Nachdem auch bei der reifen Eizelle der Kern gefunden worden ist (Hertwig II. 19a), können wir sagen, dass im gesammten Thierreich kein sicher bewiesener Fall von kernlosen Zellen existirt. Man wird mir vielleicht die rothen Blutkörperchen der Säugethiere entgegenhalten. Freilich fehlt bei ihnen ein Kern, es fehlt ihnen aber ebensogut auch das Protoplasma, und es lässt sich mit guten Gründen, die später zusammengestellt werden sollen, die Ansicht verfechten, dass die Blutscheiben der Säugethiere nicht den Werth von Elementarorganismen besitzen, sondern nur die Umwandlungs- oder Bildungsproducte ehemals vorhandener Zellen sind.
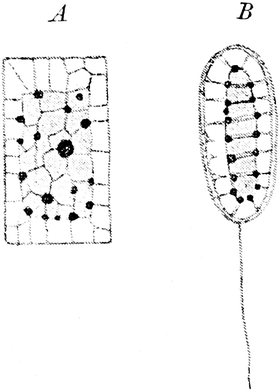
Fig. 33.
A
Oscillaria. Optischer Durchschnitt einer Zelle eines Fadens. Mit Alcohol getödtet und in Hämatoxylin gefärbt. Nach B
ÜTSCHLI
Fig. 12a.
B
Bacterium lineola (C
OHN
) im optischen Durchschnitt. Mit Alcohol getödtetes und in Hämatoxylin gefärbtes Exemplar. Nach B
ÜTSCHLI
Fig. 3a.
Eine Zuflucht findet jetzt die Lehre von der Kernlosigkeit nur noch bei den Mikroorganismen, bei den Bacterien und verwandten Formen, bei denen wegen ihrer ausserordentlichen Kleinheit die Unterscheidung von Protoplasma und Kernsubstanz auf Schwierigkeiten stösst. Indessen auch hier hat Bütschli (II. 6) die Existenz kernartiger Gebilde nachzuweisen versucht. Als solche deutet er bei Oscillarien u. a. (Fig. 33 A. B) Körper, welche bei der Verdauung durch Magensaft nicht aufgelöst werden und einzelne in Farbstoff sich intensiv färbende Körnchen (wahrscheinlich Nucleinkörnchen) beherbergen. Dieselben machen den grösseren Theil des Zellkörpers aus, während Protoplasma nur als dünne Umhüllung vorhanden ist. Bütschli’s Ansichten werden im Allgemeinen von Zacharias (II. 47) getheilt.
Wer diese Angabe nicht als beweisend anerkennen will, wird zugeben müssen, dass die Annahme, welche die Mikroorganismen ganz oder vorzugsweise aus Kernsubstanz bestehen lässt, wenigstens ebenso viel wenn nicht mehr für sich hat, als die Annahme, sie seien nur kleinste, einfache Protoplasmaklümpchen. Denn für die erste Annahme fällt ihre ausserordentliche Neigung, Farbstoffe in sich aufzunehmen, sehr in die Wagschale.
IV. Die Central- oder Polkörperchen der Zelle.
In jüngster Zeit ist neben dem Kern im Protoplasma einiger Zellen ein ausserordentlich winziges, aber durch seine Function sehr wichtiges Gebilde nachgewiesen worden, das Central- oder Polkörperchen (Centrosoma). Bei der Zelltheilung, bei deren Darstellung es uns in Capitel VI wieder beschäftigen wird, ist es schon seit längerer Zeit bekannt und spielt hier eine sehr grosse Rolle, da es den Mittelpunkt für eigenthümliche Strahlungsfiguren und überhaupt einen Mittelpunkt in der Zelle bildet, nach welchem die verschiedensten Zellbestandtheile gewissermaassen centrirt sind.
Seine Grösse liegt an der Grenze des eben sichtbaren und bleibt häufig unter dem Durchmesser kleinster Mikroorganismen zurück. Es scheint stofflich aus derselben Substanz, wie das Mittelstück der Samenfäden zu bestehen, zu welchem sich übrigens auch beim Befruchtungsprocess genetische Beziehungen ergeben (s. Cap. VII, 1). Bei den gewöhnlichen Kernfärbemethoden nimmt es keinen Farbstoff auf, lässt sich aber bei geeignetem Verfahren, namentlich durch saure Anilinfarben, wie Säurefuchsin, Safranin, Orange, lebhaft tingiren. Es ist dies das einzige Mittel, das Centralkörperchen in den Fällen, wo es nicht von einer besonderen Strahlung oder Sphäre eingehüllt ist, von andern Körnchen des Zellinhalts (Mikrosomen) zu unterscheiden.
Wenn wir von der Zelltheilung und dem Befruchtungsprocess absehen, über welche spätere Abschnitte handeln, so ist das Centralkörperchen bis jetzt am häufigsten in Lymphzellen (Flemming II. 11 u. 12b und Heidenhain II. 16), in Pigmentzellen des Hechts (Solger II. 38), in sehr flachen Epithel-, Endothel- und Bindegewebszellen von Salamanderlarven (Flemming II. 12b) aufgefunden worden.
In Lymphzellen kommt meist nur ein einziges Centralkörperchen vor (Fig. 34) und ist dies ausser der Färbung noch dadurch kenntlich gemacht, dass das Protoplasma in seiner nächsten Umgebung ein deutlich strahliges Gefüge zeigt und die später uns noch öfters beschäftigende Strahlensphäre oder Attractionssphäre bildet. Das Centralkörperchen liegt zuweilen in einer Einbuchtung des Kerns oder, wenn dieser in mehrere Stücke zerfallen ist, was bei den Lymphzellen häufig vorkommt, bald zwischen ihnen an dieser oder jener Stelle des Protoplasmakörpers.
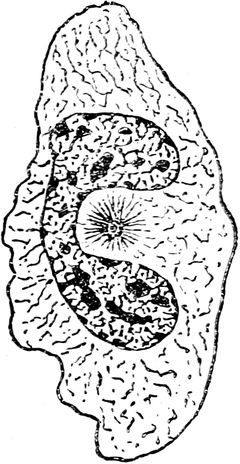
Fig. 34. Leukocyt aus dem Peritoneum einer Salamanderlarve. Der Centralkörper in der strahligen Sphäre ist zur Verdeutlichung des Zinkdrucks von einem hellen Ring umgeben dargestellt, welcher in natura fortzudenken ist.
Nach F
LEMMING
Fig. 5.
Bei Pigmentzellen (Fig. 35) hat Solger (II. 38) nur die Strahlensphäre als eine helle Stelle zwischen den Pigmentkörnchen gesehen und daraus auf die Anwesenheit eines Centralkörperchens geschlossen.
In den Epithelien der Lunge, in Endothel- und Bindegewebszellen des Bauchfells von Salamanderlarven (Fig. 36 A, B), fand Flemming fast stets anstatt eines einzigen zwei dicht zusammengelegene Centralkörperchen, entweder in grosser Nähe des im Ruhezustand befindlichen Kerns oder sogar in einer Delle desselben in unmittelbarer Nachbarschaft der Kernmembran. Eine Strahlensphäre war in diesen Fällen meist nicht nachweisbar; zuweilen waren die beiden Polkörperchen, anstatt sich fest zu berühren, ein wenig auseinandergerückt und war dann der erste Anfang einer Spindelbildung zwischen ihnen wahrzunehmen.
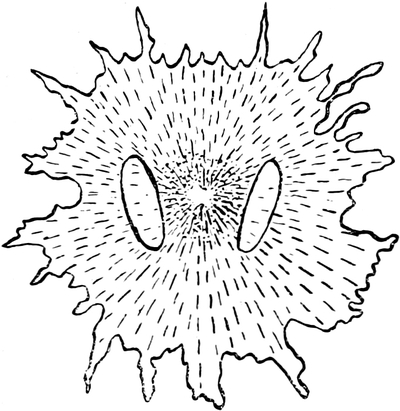
Fig. 35.
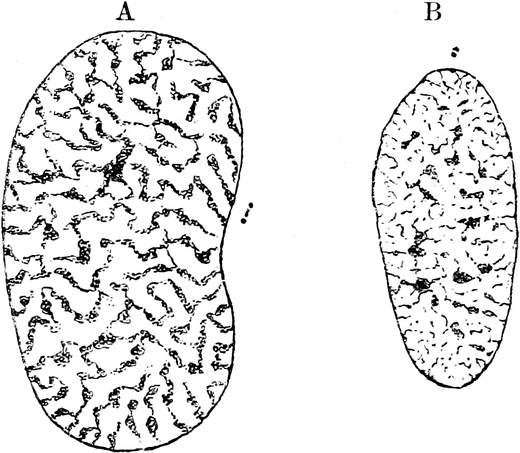
Fig. 36.
Fig. 35. Pigmentzelle des Hechts mit 2 Kernen und 1 Polkörperchen in einer Strahlensphäre. Nach SOLGER Fig. 2.
Fig. 36. A Kern einer Endothelzelle des Peritoneums einer Salamanderlarve mit in der Nähe gelegenen Polkörperchen. Nach FLEMMING Fig. 2.
B Kern einer Bindegewebszelle des Peritoneums einer Salamanderlarve mit in der Nähe gelegenen Polkörperchen. Nach FLEMMING Fig. 4.
Von van Beneden (II. 4) ist zuerst die Hypothese aufgestellt worden, dass das Centralkörperchen gleich dem Kern ein constantes Organ jeder Zelle sei und dass es sich neben dem Kern irgendwo im Protoplasma jeder Zelle eingeschlossen finden müsse. Für den ersten Theil dieser Ansicht spricht die Eigenschaft des Centralkörperchens, sich auf dem Wege der Selbsttheilung vermehren zu können (siehe Cap. VI) und seine Rolle beim Befruchtungsprocess (siehe Cap. VII, 1). Die an zweiter Stelle behauptete Zugehörigkeit der Centralkörperchen zum Protoplasma, die jetzt sehr allgemein angenommen wird, scheint mir dagegen weniger sicher gestellt zu sein.
Ich habe früher die Ansicht gehabt und halte sie aus Gründen, die ich später (siehe Cap. VI) anführen werde, auch jetzt noch für beachtenswerth, dass die Centralkörperchen für gewöhnlich Bestandtheile des ruhenden Kerns selbst sind, indem sie nach der Theilung in seinen Inhalt eintreten und bei der Vorbereitung zur Theilung in das Protoplasma wieder austreten. Nur in besonderen Fällen würde das oder die Centralkörperchen auch während der Ruhe des Kerns im Protoplasma selbst verbleiben und dann gewissermaassen neben dem Haupt- noch einen Nebenkern darstellen. Bei dieser Auffassung würde es sich erklären, dass auch mit den neueren Methoden und optischen Hülfsmitteln sich Centralkörperchen für gewöhnlich neben dem ruhenden Kern im Protoplasma der Zellen nicht nachweisen lassen.
V. Ueber die Molecularstructur organisirter Körper.
Um die chemisch-physikalischen Eigenschaften der organisirten Körper zu erklären, hat Nägeli (V. 17. 18 II. 27. 28) eine Micellarhypothese aufgestellt, welche zwar viel des Subjectiven an sich trägt, immerhin aber geeignet ist, manche complicirte Verhältnisse uns leichter verständlich und vor allen Dingen anschaulicher zu machen. Ein kurzer Abriss der Micellarhypothese, welche schon allein wegen ihrer streng logischen Durchführung Beachtung verdient, mag daher hier Platz finden.
Eine der auffälligsten Eigenschaften der organisirten Körper ist ihre Quellbarkeit, ihr Vermögen, bis zu einem gewissen Grade grosse Mengen Wasser und Substanzen, die in Wasser gelöst sind, in ihr Inneres aufzunehmen. Es kann dies so weit gehen, dass in einem organisirten Körper überhaupt nur wenige Procente fester Substanz enthalten sind.
Entsprechend der Wasseraufnahme nimmt das Volumen des Körpers zu, um sich bei Abgabe von Wasser wieder zu verkleinern. Dabei lagert sich das Wasser nicht in präexistirende, mit Luft gefüllte Hohlräume ein, wie bei einem porösen Körper, sondern es vertheilt sich gleichmässig zwischen die organisirten Theilchen, die, je grösser die Quellung ist, um so mehr auseinander rücken und durch mächtigere Wasserhüllen von einander getrennt werden müssen. Trotz der beträchtlichen Wasseraufnahme findet dabei keine Auflösung der organisirten Substanz statt. Sie verhält sich auch in dieser Beziehung verschieden von einem Krystall von Salz oder Zucker, dem auf der einen Seite die Fähigkeit der Quellung abgeht, der aber auf der andern Seite sich in Wasser auflöst, indem sich seine Moleküle von einander trennen und gleichmässig im Wasser vertheilen.
Quellungsfähigkeit und Unlöslichkeit im Wasser sind Haupteigenschaften der organisirten Körper, ohne welche der Lebensprocess nicht denkbar ist.
Manche organisirte Körper lassen sich durch geeignete Verfahren in eine Lösung überführen, so z. B. Stärke und leimgebende Substanz, wenn sie in Wasser gekocht werden. Aber auch Stärke- und Leimlösungen unterscheiden sich in ihren Eigenschaften sehr wesentlich von Lösungen von Salzen oder Zucker. Diese diosmiren leicht durch Membranen, jene nicht oder nur in geringem Maasse und bilden schleimige oder fadenziehende Lösungen. Schon Graham hat beide Gruppen von Stoffen, welche in Lösung so ungleiche Eigenschaften zeigen, von einander als Krystalloide und Colloide unterschieden.
Nägeli sucht nun alle hier namhaft gemachten Erscheinungen aus Unterschieden in der molecularen Constitution der Körper zu erklären. Wie Atome sich zu Molekülen verbinden und so eine grosse Verschiedenheit chemischer Stoffe erzeugen, so lässt er, damit die complicirteren Eigenschaften der organisirten Körper zu Stande kommen, Gruppen von Molekülen zu noch höheren Einheiten, den Micellen, zusammentreten. Im Verhältnisse zum Molekül besitzt das Micell eine beträchtlichere, wenn auch jenseits der Grenze mikroskopischer Wahrnehmung liegende Grösse und kann nicht bloss aus Hunderten, sondern aus vielen Tausenden von Molekülen aufgebaut sein.
Nägeli schreibt den Micellen einen krystallinischen Bau zu, gestützt auf die Erscheinungen der Doppelbrechung, welche viele organisirten Körper, Cellulosemembran, Stärke, Muskelsubstanz, selbst das Protoplasma im polarisirten Licht darbieten. Dabei kann ihre äussere Gestalt alle möglichen Formen zeigen, wie auch ihre Grösse eine sehr verschiedene sein wird.
Die Micellen üben eine Anziehung sowohl auf das Wasser als auch auf einander aus, woraus die Quellungserscheinungen zu erklären sind. In einem trockenen, organisirten Körper liegen die Micellen dicht an einander, nur durch geringe Wasserhüllen getrennt, diese vergrössern sich beträchtlich bei der Imbibition, indem zunächst zwischen Wasser und Micellen stärkere Anziehungskräfte wirksam sind als zwischen den Micellen untereinander. Diese werden durch das eindringende Wasser wie durch einen Keil auseinander getrieben; „zu einer Lösung kommt es aber im organisirten Körper nicht, weil die Anziehungskraft zum Wasser mit der Entfernung in einem schnelleren Verhältnisse abnimmt, als die Anziehungskraft der Micellen unter einander, und so, nachdem die Wasserhüllen eine gewisse Mächtigkeit erlangten, ein Gleichgewichtszustand, die Grenze der Quellung, erreicht wird.“
Wenn trotzdem durch geeignete Verfahren der Zusammenhang zwischen den Micellen ganz aufgehoben wird, so erhält man eine Micellarlösung. Dieselbe erscheint matt und opalescirend, ein Beweis, dass das Licht ungleich gebrochen wird. Nägeli vergleicht sie mit den schleimigen, opalescirenden Massen, welche Spaltpilze durch Aneinanderlagern erzeugen.
Die Unterschiede, die Graham zwischen Lösungen krystalloider und colloider Substanzen aufgestellt hat, beruhen nach Nägeli darauf, dass in den ersteren zwischen den Wassertheilchen vereinzelte Moleküle, in den letzteren aber krystallinische Molekülgruppen oder vereinzelte Micellen vertheilt sind. Die einen sind also Molecular-, die anderen Micellarlösungen (Lösungen von Eiweiss, Leim, Gummi etc.). Die Micellen selbst setzen dem Zerfallen in Moleküle einen grösseren Widerstand entgegen. Gewöhnlich ist dieser Zerfall mit chemischen Umwandlungen verbunden. So kann Stärke durch Umsetzung in Zucker in eine Molecularlösung übergeführt werden, desgleichen Albuminate und leimgebende Substanzen, wenn sie sich in Peptone umwandeln.
In den organisirten Körpern sind die Micellen zu regelmässigen Verbänden vereinigt. In diesen können die einzelnen Micellen aus derselben Substanz oder aus verschiedenen chemischen Substanzen bestehen, von verschiedener Grösse und Form sein; sie können auch innerhalb der Verbände sich noch zu grösseren und kleineren Micellgruppen zusammenschliessen. In den Micellarverbänden scheinen sich im Allgemeinen die Micellen in Ketten aneinander zu hängen, die sich wieder zu einem Gerüst oder Netzwerk mit engeren oder weiteren Maschen verbinden. In den Lücken oder Micellarinterstitien ist Wasser eingeschlossen. „Nur auf diesem Wege wird es möglich, mit wenig Substanz und viel Wasser ein festes Gefüge herzustellen, wie es die Gallerte darbieten.“
Das in organisirten Körpern enthaltene Wasser kann sich in drei verschiedenen Zuständen befinden, die von Nägeli als Constitutions- oder Krystallwasser, als Adhäsionswasser und als Capillarwasser unterschieden werden. Unter dem ersteren versteht man die Wassermoleküle, die wie bei einem Krystall mit den Substanzmolekülen sich zur Constitution des Micells fest und in bestimmter Menge verbunden haben. Adhäsionswasser wird gebildet von den Wassermolekülen, welche an der Oberfläche der Micelle durch Molecularattraction festgehalten werden. „In der Wassersphäre, welche eine Micelle umkleidet, ist in den concentrischen Wasserschichten die Verdichtung und die Unbeweglichkeit des Wassers sehr verschieden, und diese erreicht natürlich unmittelbar an der Oberfläche der Micelle ihren grössten Werth.“ (Pfeffer.) Das Capillarwasser endlich füllt ausserhalb der attractiven Wirkungssphäre der einzelnen Micellen die Lücken zwischen den Micellengerüsten aus. „Diese drei Arten von Wasser weichen in dem Grade der Beweglichkeit ihrer Moleküle von einander ab. Das capillare Wasser hat die vollen Molecularbewegungen des freien Wassers; in dem Adhäsionswasser sind die fortschreitenden Bewegungen der Molecüle mehr oder weniger vermindert, und in dem Constitutionswasser befinden sich die Moleküle in einem starren, unbeweglichen Zustande.“ „Die Diosmose durch eine Membran kann also nur durch das capillare und das Adhäsionswasser vermittelt werden.“
Wie an der Oberfläche der Micelle Wassertheilchen durch Molecularattraction festgehalten werden, so können sich ihnen auch andere Stoffe (Kalk- und Kieselsalze, Farbstoffe, stickstoffhaltige Verbindungen etc.) anlagern, nachdem sie in gelöstem Zustand in den organisirten Körper aufgenommen worden sind. Das Wachsthum organischer Substanz durch Intussusception stellt sich Nägeli in der Weise vor, dass Substanztheilchen in gelöstem Zustand in den organisirten Körper eindringen, so zum Beispiel Zuckermoleküle in eine Cellulosemembran, und hier entweder sich den vorhandenen Micellen anlagern und zur Vergrösserung derselben dienen oder zwischen den vorhandenen Micellen zu neuen Micellen gewissermaassen auskrystallisiren. Hierbei würden die als Beispiel benutzten Zuckermoleküle sich in Cellulosemoleküle chemisch umsetzen.
Auf die Nägeli’sche Micellarhypothese wird in späteren Abschnitten öfters Bezug genommen werden, wenn es gilt, sich eine Vorstellung von der complicirten Stoffanordnung im Elementarorganismus zu machen.
Literatur. II.
2) Jul. Arnold. Ueber feinere Structur der Zellen unter normalen und pathologischen Bedingungen. Virchows Archiv. Bd. 77. 1879. pag. 181.
Derselbe. La cytodiérèse chez les arthropodes. Bd. I.
Derselbe. La vésicule germinative et les glob. polaires chez divers nématodes.
Derselbe. Conférence donnée à la société belge de microscopie. Bd. III.
9) Engelmann. Ueber den fasrigen Bau d. contractilen Substanzen. Pflügers Archiv. Bd. 26.
12a) Derselbe. Neue Beiträge zur Kenntniss der Zelle. II. Theil. Archiv f. mikroskop. Anat. Bd. 37. pag. 685.]
14b) Derselbe. Zelle. Realencyklopädie der gesammten Heilkunde. 2. Aufl. 1890.
22) Kölliker. Handbuch der Gewebelehre. 1889.]
23) Kossel. Zur Chemie des Zellkerns. Zeitschrift für physiolog. Chemie von Hoppe-Seyler. 1882. Bd. 7.
Derselbe. Untersuchungen über die Nucleine und ihre Spaltungsprodukte. Strassburg 1881.
25) Leydig. Untersuchungen zur Anatomie u. Histologie der Thiere. Bonn 1883.
29) Pfitzner. Beiträge zur Lehre vom Bau des Zellkerns u. seinen Theilungserscheinungen. Archiv f. mikrosk. Anatomie. Bd. 22. 1883.
30) v. Rath. Ueber eine eigenartige polycentrische Anordnung des Chromatins. Zoolog. Anzeiger. 1890.
31) Rauber. Neue Grundlegungen zur Kenntniss der Zelle. Morphol. Jahrb. VIII. 1882.
34) Schäfer u. E. R. Lankester. Discussion on the present aspect of the cell question. Nature. Vol. 36. 1887.
39) Strasburger. Zellbildung und Zelltheilung. 2. Aufl. Jena 1876.
40) Derselbe. Studien über das Protoplasma. Jenaische Zeitschr. 1876. Bd. X.
42) Wiesner. Elementarstructur und Wachsthum der lebenden Substanz.
46) Derselbe. Beiträge zur Kenntniss des Zellkerns u. der Sexualzellen. Botan. Zeitung. 1887. Bd. 45.
50) Auerbach. Organologische Studien. Heft I. 1874.