ACHTES CAPITEL. Wechselwirkungen zwischen Protoplasma, Kern und Zellproduct.
Reading edition
In einem lebenden Organismus stehen notwendiger Weise alle morphologisch unterscheidbaren Theile in bestimmten, gesetzmässigen Wechselwirkungen zu einander. In dieselben einen Einblick zu gewinnen, ist bei der ganzen Complication des Lebensprocesses in den meisten Fällen ausserordentlich schwer. Immerhin ist auch hier durch Beobachtung und Experiment schon ein erfreulicher Anfang gemacht, um das dunkle Gebiet unserer Erkenntniss zu erschliessen.
Auf eine Betheiligung des Protoplasma an allen formativen Processen, an der Bildung der Zellmembran, der Intercellularsubstanzen etc. weisen verschiedenartige Befunde hin, welche sich wohl kaum in einer anderen Weise erklären lassen.
Bei Pflanzen ist stets an den Stellen, von denen das Wachsthum hauptsächlich ausgeht, die Hauptmasse des Protoplasma angesammelt: so an den Spitzen wachsender Wurzelhaare, sprossender Pilzfäden etc., an den Vegetationspunkten vielzelliger und einzelliger Pflanzen, wie Caulerpa.
Auch in der einzelnen Zelle häuft sich das Protoplasma stets an den Orten grösster formativer Thätigkeit an.
Wenn in einer Pflanzenzelle sich die Cellulosemembran zu vorspringenden Leisten oder sonstigen Sculpturen verdickt, geht das Protoplasma schon einige Zeit, ehe die Verdickungen angelegt werden, vorbereitende Veränderungen ein, indem es sich zu den Stellen des stärkeren Wachsthums hinbegiebt. Auch während sich die Leisten und Verdickungen bilden, gehen an ihnen fortwährend Ströme von körnigem Protoplasma entlang.
Wenn bei Vaucheria ein kleines Stück abgetrennt wird, so sucht alsbald das Protoplasma den Defect wieder zu ergänzen. Man sieht „zu der Wunde körniges Plasma in dichteren Massen herandrängen und sich zu einer nach aussen scharf begrenzten Schicht zusammenschliessen. An dieser beginnt sich alsbald Zellhaut zu bilden.“ (Klebs.)
Wenn man durch Plasmolyse den Protoplasmakörper einer Pflanzenzelle von seiner Membran abgelöst hat, ohne dass er dadurch in seinen Lebensfunctionen gelitten hat, so scheidet er nach kurzer Zeit wieder auf seiner Oberfläche eine neue Celluloseschicht aus, welche sich durch Zusatz von Congoroth zum Wasser roth färben lässt.
Solange Zellen jung und in kräftigem Wachsthum begriffen sind, enthalten sie die grösste Menge von Protoplasma, während dasselbe in alten Zellen, namentlich wenn dieselben ihre formative Thätigkeit eingestellt haben, oft nur in geringen Spuren nachzuweisen ist. So kann in grossen, ausgewachsenen Pflanzenzellen der protoplasmatische Beleg an der Innenfläche der Cellulosemembran so außerordentlich dünn werden, dass er als ein besonderes Häutchen nur vermittelst der Plasmolyse nachzuweisen ist. Ebenso ist in den blasigen Chordazellen der Thiere etc. Protoplasma nur noch in geringen Spuren vorhanden.
Besonders ist gegenwärtig die Forschung auf die Beziehungen des Kerns zu den übrigen Bestandteilen der Zelle gerichtet. Dass derselbe namentlich während des ganzen Theilungsprocesses in sehr auffälligen Wechselbeziehungen zum Protoplasmakörper steht, wurde schon früher gezeigt. (Seite 172). Aber auch zu anderen Zeiten spielt er offenbar eine wichtige, physiologische Rolle im Leben der Zelle; alle formativen und nutritiven Processe scheinen in einem näheren, zur Zeit allerdings nicht genauer zu definirenden Abhängigkeitsverhältniss von ihm zu stehen, wie sich aus den jetzt näher zu besprechenden Beobachtungen von Haberlandt und Korschelt, sowie aus Experimenten von Gruber, Nussbaum, Balbiani, Klebs und Hofer schliessen lässt.
I. Beobachtungen über Stellungen des Kerns, welche auf eine Betheiligung bei formativen und nutritiven Processen hinweisen.
Nach den ausgedehnten, wichtigen Untersuchungen von Haberlandt (VIII. 4) befindet sich der Kern von jungen, sich entwickelnden Pflanzenzellen „meist in grösserer oder geringerer Nähe derjenigen Stelle, an welcher das Wachsthum am lebhaftesten vor sich geht oder am längsten andauert. Dies gilt sowohl für das Wachsthum der ganzen Zelle als solcher, wie auch speciell für das Dicken- und Flächenwachsthum der Zellhaut. Ist mehr als eine Stelle im Wachsthum bevorzugt, so nimmt der Kern eine solche centrale Lage ein (Fig. 161 II), dass er von den Orten ausgiebigsten Wachsthums ungefähr gleichweit entfernt ist. Zuweilen stellen Plasmastränge (Fig. 161 II) eine Verbindung der Kerne mit den Wachsthumsstätten auf kürzestem Wege her. In der ausgebildeten Zelle behält der Kern seine frühere Lage nur in der kleineren Anzahl der Fälle bei. Gewöhnlich verlässt er den in der wachsenden Zelle innegehabten Platz und zeigt dann zumeist eine unbestimmte, in einzelnen Fällen jedoch aufs Neue eine bestimmte Lagerung.“
Von den zahlreichen Beobachtungen, an denen Haberlandt diese Sätze begründet, theile ich einige besonders lehrreiche Beispiele mit.
Die Epidermiszellen vieler Pflanzen zeigen häufig Verdickungen entweder an ihrer nach aussen oder nach innen gerichteten Wandfläche. Je nachdem liegt der Kern entweder der Aussenwand oder der Innenwand und zwar der Mitte der Verdickung dicht an. In sehr anschaulicher Weise lehren dies die in Fig. 161 zusammengestellten Beispiele: Nr. I eine Zellreihe von der Epidermis des Laubblattes von Cypripedium insigne, Nr. III eine Epidermiszelle der Fruchtschale von Carex panicea. Nr. IV. eine junge Epidermiszelle des Laubblattes von Aloë verrucosa.
Eine zweite Reihe von Beobachtungen betrifft das Wachsthum ober- und unterirdischer Pflanzenhaare.
Die zarten Wurzelhaare der Pflanzen zeigen ein deutlich ausgesprochenes Spitzenwachsthum. Hier findet sich denn auch der Kern, so lange das Wachsthum andauert, stets in der Spitze (Fig. 162 A), während er in ausgewachsenen, alten Haaren sich weiter von ihr entfernt hat. Wenn ein Wurzelhaar sich aus einer Epidermiszelle neu anlegt, so geschieht dies stets durch Ausstülpung der über dem Zellkern gelegenen Parthie der Aussenwand (Fig. 162 B). Bei manchen Pflanzen (Brassica oleracea) kann sich die Zelle des Wurzelhaares verzweigen, wobei dann der einfache Kern in einen der Zweige hereinrückt. Dieser wird dann sowohl der protoplasmareichste, als auch der längste, während die anderen Zweige zu wachsen aufhören.
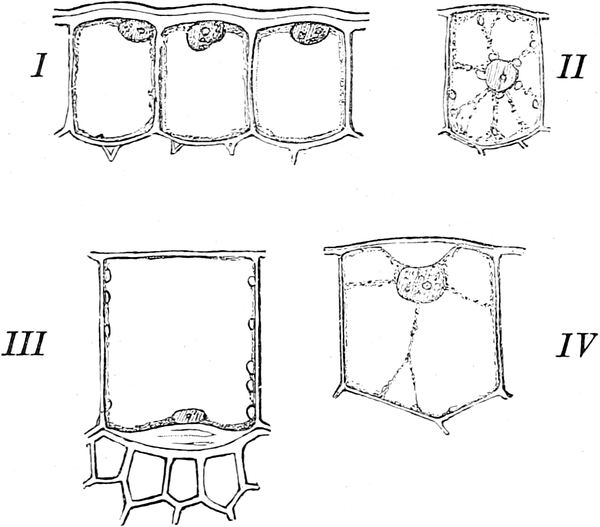
Fig. 161.
I
Epidermiszellen des Laubblattes von Cypripedium insigne.
Nach H
ABERLANDT
Taf. I, Fig. 1.
II
Epidermiszelle von Luzula maxima.
Nach H
ABERLANDT
Taf. I, Fig. 3.
III
Epidermiszelle der Fruchtschale von Carex panicea.
Nach H
ABERLANDT
Taf. I, Fig. 14.
IV
Junge Epidermiszelle des Laubblattes von Aloë verrucosa.
Nach H
ABERLANDT
Taf. I, Fig. 7.
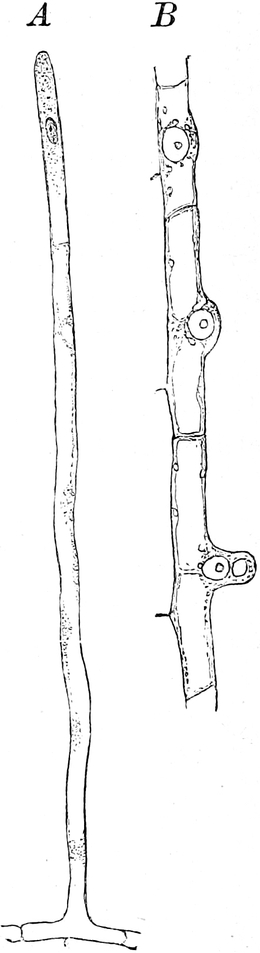
Fig. 162.
A
Wurzelhaar von Cannabis sativa.
Nach H
ABERLANDT
Taf. II, Fig. 26.
B
Entstehung der Wurzelhaare von Pisum sativum.
Nach H
ABERLANDT
Taf. II, Fig. 22.
Von den Wurzelhaaren unterscheiden sich die oberirdischen Haare dadurch, dass sie ein basipetales, intercalares Wachsthum besitzen, wie Haberlandt durch Messungen festgestellt hat. In Folge dessen liegt hier der Kern nicht in der Spitze, sondern ungefähr da, wo sich der secundäre, basale Vegetationspunkt befindet und das Längenwachsthum am längsten andauert.
Unter Sternhaaren (Fig. 163) versteht man eigenthümliche, einzellige Gebilde, die sich nach ihrem peripheren Ende in mehrere, in radiärer Richtung auseinander weichende Zweige spalten. Hier liegt der Kern im Mittelpunkt der Verzweigung, so lange die formativen Processe andauern, rückt dann aber nach beendetem Wachsthum wieder näher an die Basis heran.
Auch Pilze und Algen liefern Belege für eine Theilnahme des Kerns an den formativen Processen. Bei den vielkernigen Hyphen von Saprolegnia bilden sich seitliche Schläuche stets unmittelbar über einem in nächster Nähe der Wandung befindlichen Kern. Bei Vaucheria und anderen vielkernigen Algen giebt es, wie bei den höheren Pflanzen, besondere Vegetationspunkte, von denen das hauptsächliche Wachsthum ausgeht; an diesen sieht man nun zahlreiche kleine Kerne der Cellulosemembran unmittelbar angelagert, dann folgt eine Schicht von Chromatophoren, während in dem übrigen Theil der Zelle die Lage gerade eine umgekehrte ist.
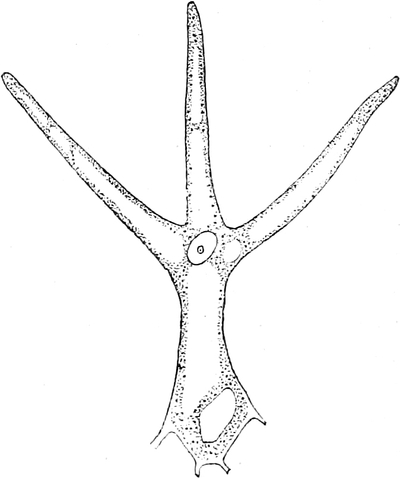
Fig. 163. Junges Sternhaar von Autrietia delloidea.
Nach H
ABERLANDT
Taf. II, Fig. 28.
Noch auffälliger ist die Beziehung der Kerne zur Bildung der Zellhaut bei den Erscheinungen, die sich bei der Wundheilung von Vaucheria beobachten lassen. Denn jetzt treten in dem an der Wundstelle sich ansammelnden Protoplasma zahlreiche kleine Kerne auf; sie rücken also an die Oberfläche empor, die Chlorophyllkörner dagegen werden gerade in entgegengesetzter Richtung zurückgezogen. Kerne und Chlorophyllkörner tauschen so ihre Plätze gegen einander aus. Durch diese Wahrnehmung widerlegt sich zugleich der sonst leicht zu erhebende Einwand, dass der oder die Kerne einfach an den Stellen vorgefunden würden, zu denen das Protoplasma in grösserer Menge zuströme und sie mit sich schleppe. Denn dann wäre eine gleichzeitige entsprechende Verlagerung der viel kleineren Chlorophyllkörner noch eher zu erwarten, zumal diese ja unter dem Einfluss verschiedener Beleuchtung sehr leicht ihren Ort verändern. Von dieser Wanderung bleiben nun aber wieder die Kerne unberührt.
„Wir sehen also,“ bemerkt Haberlandt, „dass Zellkerne und Chlorophyllkörner unabhängig von einander bestimmte Ortsveränderungen zeigen, welche, vorausgesetzt, dass dieselben passiv erfolgen, keinenfalls durch Bewegungen des gesammten Körnerplasmas bewirkt werden können. Wenn nun das strömende Plasma betreffs der mitzuführenden Inhaltskörper gewissermaassen eine bestimmte Auswahl trifft, in dem einen Falle den grösseren Zellkern mitschleppt, die kleineren Chromatophoren zurücklässt, im anderen Falle wieder die Chromatophoren verschiebt und die ebenso kleinen oder oft noch kleineren Zellkerne unverrückt lässt, so kann eine solche Verschiedenheit der Bewegungs-Erscheinungen doch nur den Sinn haben, dass durch dieselben bestimmte, mit der Function der Kerne, beziehungsweise der Chromatophoren zusammenhängende Lagerungsweisen bezweckt werden.“
Aehnliche Beziehungen zwischen Lage und Function der Kerne, wie Haberlandt für die Pflanzenzellen, hat Korschelt (VIII. 8) für thierische Zellen nachgewiesen.
Zellen, welche sich durch reichliche Aufnahme von Reservestoffen beträchtlich vergrössern, sind die Eier. Diese haben häufig das Keimbläschen an dem Orte gelagert, an dem vorzugsweise die Stoffaufnahme vor sich gehen muss. So nehmen z. B. bei einem Theil der Cölenteraten die Eier ihre Entstehung aus dem Entoderm und werden aus dem Inhalt des Gastrovascularsystems durch Vermittelung von Entodermzellen ernährt. In Uebereinstimmung mit dem oben aufgestellten Satz liegen in jungen Eiern die Keimbläschen ganz oberflächlich und zwar an der nach der Gastralhöhle zugewandten Seite (Fig. 164). Bei manchen Actinien (Hertwig VIII. 5b) reichen die Eier sogar noch lange Zeit mit einem stielartigen Fortsatz in das Darmepithel bis an seine Oberfläche heran (Fig. 165). Der Stiel lässt eine regelmässig fibrilläre Structur erkennen, wie sie überall da auftritt, wo ein reger Stoffaustausch stattfindet und dieser Stoffaustausch bestimmte Bahnen einhält; er lässt sich daher als ein besonderer Nährapparat des Eies in Anspruch nehmen. Auch hier liegt das Keimbläschen regelmässig der Basis des Nährapparats unmittelbar an (Fig. 165).
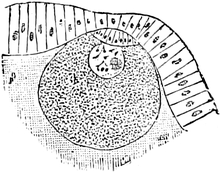
Fig. 164. Junges Ei von Adamsia rondeleti.
Vergr. 145. Nach K
ORSCHELT
Ste. 47, Fig. 8.
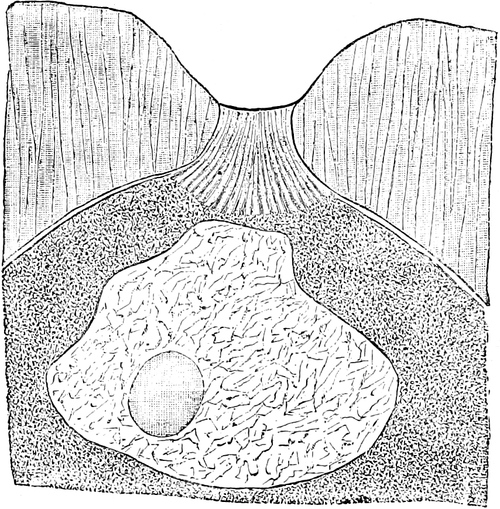
Fig. 165. Querschnitte durch das periphere Ende und den Stiel von Eizellen der Sagartia parasitica
(nach O. und R. H
ERTWIG
). Nach K
ORSCHELT
Fig. 10.
Nach oben sieht man den gestreiften Stiel der Eizelle in das Epithel eindringen.
Ein ähnliches Verhalten trifft man in den schlauchförmigen Ovarien der Insekten, die in Eifächer und in Nährfächer gegliedert sind. Entweder ist hier wieder das Keimbläschen an das Nährfach dichter herangerückt, oder es zeigt das noch interessantere Verhalten, dass es nach dem Nährfach zu zahlreiche, pseudopodienartige Fortsätze (Fig. 166) ausstreckt und dadurch nach der Seite, wo die Stoffaufnahme stattfindet seine Oberfläche in auffälliger Weise vergrössert. Hier beginnt sich denn auch der Dotter in der Umgebung des Keimbläschens in zahlreichen, dunkeln Körnchen abzuscheiden, welche von den Nährzellen zugeführt worden sind.
Bei den meisten Thieren werden die Eier durch Vermittelung des Follikelepithels ernährt. Korschelt findet dementsprechend, dass bei Insekten die Kerne der Follikelzellen, so lange die Bildung des Dotters und des Chorions vor sich geht, unmittelbar an der nach dem Ei gerichteten Oberfläche liegen, dagegen nach Fertigstellung des Chorions in die Mitte der Zelle zurückweichen.
Noch frappanter ist das Verhalten der Kerne in den sogenannten Doppelzellen, welche strahlenartige Chitinfortsätze an dem Chorion der Eier von Wasserwanzen (Ranatra und Nepa) erzeugen (Fig. 167 A B). Die Protoplasmakörper der beiden Zellen, welche einen Strahl zwischen sich ausscheiden, verschmelzen. Während der Ausscheidung schicken die beiden überaus grossen Kerne an der nach dem Strahl zugekehrten Seite zahlreiche, feine Fortsätze aus.
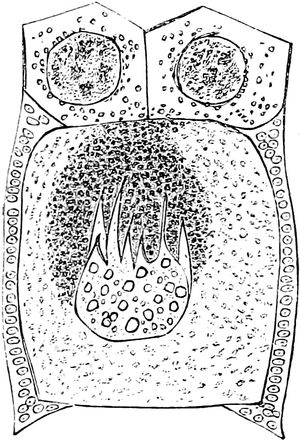
Fig. 166.
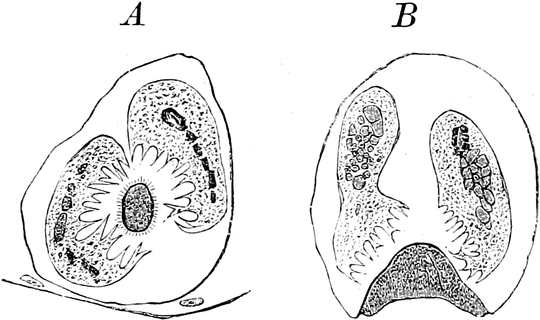
Fig. 167.
Fig. 166. Ein Eifollikel von Dytiscus marginalis mit angrenzendem Nährfach, in welchem eine reichliche Körnchenausscheidung stattfindet. Das Keimbläschen des Eies sendet Fortsätze aus nach der Richtung der Körnchenanhäufungen. Nach KORSCHELT Taf. I, Fig. 20.
Fig. 167. A Querschnitt einer secernirenden Doppelzelle aus dem Eifollikel von Nepa cinerea L. Die Bildung des Strahles ist noch im Gange. Vergr. 270fach. Nach KORSCHELT Taf. V, Fig. 120.
B Längsschnitt einer Doppelzelle aus dem Eifollikel von Nepa. Bildung der Basis des Strahles. Vergr. 195fach. Nach KORSCHELT Taf. V, Fig. 121.
Aus diesen und ähnlichen Beobachtungen ziehen Haberlandt und Korschelt folgende, die Function des Zellkerns betreffende Schlüsse:
1) „Die Thatsache, dass der Kern gewöhnlich blos in der jungen, sich erst entwickelnden Zelle eine bestimmte Lagerung zeigt, weist darauf hin, dass seine Function hauptsächlich mit den Entwickelungsvorgängen der betreffenden Zelle zusammenhängt.“ (Haberlandt.)
2) „Aus der Art seiner Lagerung ist zu schliessen, dass der Kern beim Wachsthum der Zelle, speciell beim Dicken- und Flächenwachsthum der Zellhaut, eine bestimmte Rolle spielt. Damit ist nicht ausgeschlossen, dass er in der ausgebildeten Zelle eventuell noch andere Functionen zu erfüllen hat.“ (Haberlandt.)
3) Der Kern ist wie bei der Abscheidung, so auch bei der Nahrungsaufnahme der Zelle betheiligt. Ausser in der Lage kann sich dies auch darin kundgeben, dass der Kern nach dem Ort der Abscheidung und der Stoffaufnahme seine Oberfläche durch Ausstrecken zahlreicher Fortsätze vergrössert.
II. Experimente, aus denen sich auf eine Wechselwirkung zwischen Kern und Protoplasma schliessen lässt.
Zu gleichem Ergebnisse haben die experimentellen Untersuchungen von Gruber, Nussbaum, Hofer, Verworn, Balbiani und Klebs geführt. Die Methode besteht darin, dass man in irgend einer Weise einen einzelligen Organismus oder eine einzelne Zelle in ein kernhaltiges und in ein kernloses Stück trennt und dann das weitere Verhalten derselben verfolgt und vergleicht.
Durch Plasmolyse in 16% Zuckerlösung konnte Klebs (IV. 14, VIII. 7) die Zellen von Spirogyrafäden in ein kernhaltiges und mehrere kernlose Stücke zerlegen. Obwohl die letztern zuweilen sechs Wochen am Leben blieben, ehe sie zerfielen, bestand doch in ihrer Lebensfunction ein grosser Unterschied im Vergleich zu den kernhaltigen Theilstücken. Die kernhaltigen Stücke fahren fort zu wachsen und umgeben sich mit einer neuen, durch Congoroth leicht nachweisbaren Zellhaut. Die kernlosen dagegen bleiben vollständig kuglig, vergrössern sich nicht und können keine Zellhaut bilden. Wie weit der letztere Process vom Vorhandensein des Kerns beeinflusst wird, geht in besonders auffälliger Weise daraus hervor, dass, wenn die durch Plasmolyse erhaltenen Theilstücke nur noch durch eine feine Plasmabrücke verbunden sind, dieser Zusammenhang schon genügt, um das kernlose Stück zur Abscheidung von Cellulose zu befähigen.
Indessen gehen im Protoplasma gewisse Stoffwechselprocesse auch ohne Anwesenheit des Zellkerns vor sich; zum Beispiel assimiliren die kernlosen Stücke noch und vermögen sowohl Stärke aufzulösen, als auch neu zu bilden, vorausgesetzt dass sie einen Theil des Chlorophyllbandes besitzen. Wenn sie längere Zeit im Dunkeln gehalten sind, werden sie stärkefrei durch Verbrauch der vorher abgelagerten Körnchen; in das Licht zurückgebracht, füllen sich die Chlorophyllbänder wieder mit neuassimilirter Stärke; ja, es wird hier sogar reichlicher als beim kernhaltigen Theil Stärke angesammelt, wahrscheinlich aus dem naheliegenden Grunde, weil der Verbrauch der Stärke bei dem Daniederliegen aller übrigen Lebensfunctionen auf ein Minimum herabgesetzt ist.
Kernlose Theilstücke von Funaria hygrometrica zeigen ein etwas abweichendes Verhalten, indem sie zwar Stärke auflösen, aber keine neue bilden können, trotzdem sie 6 Wochen am Leben bleiben.
Beim Zerschneiden von Vaucheria erhält man grössere und kleinere Protoplasmaklumpen theils mit, theils ohne Kern. Die Lebensfähigkeit derselben, sowie das Abscheiden einer neuen Cellulosehülle ist an das Vorhandensein von mindestens einem Zellkern geknüpft (Haberlandt VIII. 4).
Nicht mindere wichtige Ergebnisse wie bei den Pflanzen sind durch Zerstückelungen von Amöben, Rhizopoden und Infusorien gewonnen worden. Wie Nussbaum (VIII. 9), Gruber (VIII. 3), Hofer (VIII. 6) und Verworn (VIII. 10) in übereinstimmender Weise mittheilen, können nur kernhaltige Theilstücke die verloren gegangenen Organe wieder durch Neubildung ersetzen und sich zu einem normalen Individuum, das wächst und sich vermehrt, umgestalten. Kernlose Theile, selbst wenn sie grösser als die kernhaltigen sind, können sich weder ergänzen noch wachsen, aber längere Zeit, oft mehr als 14 Tage, eine Art von Scheindasein führen; schliesslich aber zerfallen sie. Die formative Thätigkeit des Protoplasma scheint daher in erster Linie unter dem Einfluss des Kerns zu stehen. Weniger sicher gestellt ist dies für andere Functionen der Zelle, wie für die Bewegungsfähigkeit, für die Reizbarkeit und für die Verdauungsprocesse. Die Urtheile der einzelnen Beobachter gehen hier auseinander.
Bei Amöben sah Hofer das kernlose Theilstück, nachdem das erste durch die Operation bedingte Reizstadium überwunden war, 15–20 Minuten lang ziemlich normale Bewegungen ausführen; er erblickt hierin noch eine Nachwirkung des Kernes, welchem er einen regulatorischen Einfluss auf die Bewegungen des Protoplasma zuschreibt. Denn während weiterhin das kernhaltige Stück wie ein normales Individuum die Pseudopodien ausstreckt und sich fortbewegt, bleibt der kernlose Theil zu einem rundlichen Körper zusammengezogen und macht nur ab und zu nach stundenlangen Ruhepausen anormale, ruckartige Bewegungen; er heftet sich an der Unterlage nicht fest, wie herumkriechende Amöben thun, und beginnt daher bei der geringsten Wasserbewegung zu flottiren.
Eine grössere Unabhängigkeit der Protoplasmabewegung vom Einfluss des Kerns fand Verworn bei Difflugia. Selbst kleine, kernlose Theilstücke streckten in der für das unverletzte Rhizopod charakteristischen Weise lange, fingerförmige Pseudopodien aus und setzten noch nach fünf Stunden ihre Bewegungen fort. Auch waren sie noch vollkommen reizbar und reagirten auf mechanische, galvanische und chemische Reize durch Contraction ihres Körpers.
Protisten, welche besondere locomotorische Organe, wie Cilien, Wimpern, Cirrhen etc. entwickelt haben, lassen nach Verworn bei Theilungsversuchen eine vollständige Autonomie und Unabhängigkeit derselben vom Kern erkennen.
Bei Lacrymaria führt jeder des Kerns beraubte Körpertheil nach seiner Abtrennung vom Körper dieselben Bewegungen aus, wie zur Zeit, als er noch mit ihm in Zusammenhang stand. Kleine Stücke von Stylonichia, die mit einer Anzahl Bauchwimpern versehen sind, machen mit diesen noch die eigenthümlichen Laufbewegungen. Selbst bei einem kleinsten Plasmastückchen, das nur eine einzige Sprungcirrhe besitzt, fährt diese in ihren charakteristischen Bewegungen fort. Wenn sie nach hinten gerichtet war, wird sie von Zeit zu Zeit plötzlich nach vorn geschnellt, wodurch dem Theilstück ein kurzer Ruck nach rückwärts ertheilt wird; darauf kehrt sie selbst wieder in die Ruhelage zurück u. s. w.
Gleich den Cilien und Cirrhen zeichnen sich auch die contractilen Vacuolen der Protisten durch vollständige Autonomie aus. Denn auch an kernlosen Stücken kann man sehen, wie sie sich tagelang rhythmisch contrahiren (Verworn).
In Bezug auf die Verdauung endlich macht sich ein erheblicher Unterschied zwischen kernlosen und kernhaltigen Theilstücken bemerkbar. Während von letzteren gefressene, kleine Infusorien, Räderthierchen etc. in der normalen Weise verdaut werden, hat bei ersteren die Verdauung sowohl der Zeit nach, als auch an Intensität eine erhebliche Abnahme erfahren. Man könnte hieraus schliessen, dass es dem Protoplasma nur unter der Mitwirkung des Kerns möglich ist, verdauende Secrete zu produciren (Hofer, Verworn).
Dass zwischen einzelnen Beobachtungen und Experimenten, die im achten Capitel mitgetheilt wurden, noch Widersprüche bestehen, wird nicht Wunder nehmen, wenn man die Schwierigkeit der zu lösenden Aufgaben im Auge behält.
Literatur. VIII.
1) Balbiani. Recherches expérimentales sur la mérotomie des Infusoires ciliés. Prem. part. Recueil. Zool. Suisse. 1889.
Derselbe. Ueber künstliche Theilung bei Infusorien. Biolog. Centralbl. Bd. IV u. V.
5a) Oscar u. Richard Hertwig. Ueber den Befruchtungs- u. Theilungsvorgang des thierischen Eies unter dem Einfluss äusserer Agentien. Jena 1887.