DRITTES CAPITEL. Die Lebenseigenschaften der Zelle. I. Die Bewegungserscheinungen.
Reading edition
Alle Räthsel des Lebens, welche Pflanzen und Thiere darbieten, sind schon im Keim in der einfachen Zelle eingeschlossen. Wie der zusammengesetzte ganze Organismus, hat auch jede einzelne Zelle ihr eigenes Leben. Wollen wir daher noch tiefer in das Wesen von Protoplasma und Kern eindringen, so müssen wir uns vor allen Dingen noch mit dem Wichtigsten von Allem, mit ihren Lebenseigenschaften bekannt machen. Das Leben aber, auch das Leben des allereinfachsten Elementarorganismus, ist ein ausserordentlich zusammengesetztes und schwer definirbares Phänomen; es äussert sich, im Allgemeinen ausgedrückt, darin, dass die Zelle kraft ihrer eigenen Organisation und unter den Einflüssen der Aussenwelt beständig Veränderungen erfährt und Kräfte entfaltet, wobei ihre organische Substanz auf der einen Seite unter bestimmten Kraftäusserungen beständig zerstört, auf der andern Seite wieder neu erzeugt wird. Auf dem beständigen Ineinandergreifen organischer Zerstörung und organischer Neubildung beruht, wie Claude Bernard (IV. 1a) sich ausdrückt, der ganze Lebensprocess.
Am zweckmässigsten lässt sich dieses complicirteste aller Phänomene in vier verschiedene Gruppen von Erscheinungen zerlegen. Jeder lebende Elementarorganismus zeigt uns nämlich vier verschiedene Grundfunctionen oder Grundeigenschaften, in denen sich sein Leben zu erkennen giebt: er kann seine Form verändern und Bewegungen ausführen; er reagirt auf bestimmte Reize der Aussenwelt in verschiedener Weise, ist mithin reizbar; er kann sich ernähren, Stoffe aufnehmen, umwandeln und wieder abgeben, dabei formt er Substanzen, welche zum Wachsthum, zur Gewebebildung und für spezifische Leistungen des Lebens dienen; endlich kann er sich durch Fortpflanzung vermehren.
Die Lebenseigenschaften der Zelle besprechen wir daher in vier Capiteln, und zwar in folgender Reihenfolge:
1. die Bewegungserscheinungen, 2. die Reizerscheinungen, 3. den Stoffwechsel und die formative Thätigkeit, 4. die Fortpflanzung.
Daran schliesst sich noch ein besonderes Capitel über den Befruchtungsprocess.
Viele verschiedene Arten von Bewegungen können sich, wie ein ausgedehntes vergleichendes Studium lehrt, am Zellkörper abspielen. Wir unterscheiden hier: 1. die eigentliche Protoplasmabewegung, 2. die Flimmer- und Geisselbewegung, 3. die Bewegung der pulsirenden Vacuolen, 4. die Bewegungen und Formveränderungen, welche Zellkörper passiv erfahren.
Ausser diesen vier Arten giebt es noch einige besondere Bewegungsphänomene, die in späteren Abschnitten zweckmässiger besprochen werden, zum Beispiel die Empfängnisshügel, die an der Eizelle in Folge der Befruchtung entstehen, die Strahlenfiguren, die in der Umgebung des in das Ei eingedrungenen Samenfadens und beim Theilungsprocess der Zelle wahrgenommen werden, die Zerschnürung des Zellkörpers in zwei oder mehrere Stücke bei der Theilung.
I. Die Protoplasmabewegung.
Obwohl von jedem Protoplasma wahrscheinlich Bewegungen ausgeführt werden können, so sind dieselben doch meist wegen ihrer ausserordentlichen Langsamkeit für unsere jetzigen Erkenntnissmittel nicht wahrnehmbar; es sind immer nur vereinzelte Objecte im Pflanzen- und Thierreich, welche sich zum Studium und zur Demonstration des Phänomens eignen. Dasselbe äussert sich theils in einer Veränderung der äusseren Form des Zellkörpers, theils in Verlagerungen der im Protoplasma eingeschlossenen Theile, des Zellenkerns, der Körner und Körnchen und Vacuolen.
Die Erscheinungen fallen etwas verschieden aus, je nachdem es sich um Bewegungen nackter Protoplasmakörper oder solcher handelt, die in eine feste Membran eingeschlossen sind.
a) Bewegungen nackter Protoplasmakörper.
Kleine, einzellige Organismen, weisse Blut- und Lymphkörperchen, Bindegewebszellen u. s. w. führen Bewegungen aus, welche man nach den Amöben, die das Schauspiel am schönsten darbieten, als amöboide bezeichnet.
Wenn man ein Lymphkörperchen des Frosches (Fig. 37) unter geeigneten Bedingungen beobachtet, wird man dasselbe fortwährend Formveränderungen erleiden sehen. An der Oberfläche treten kleine Fortsätze von Protoplasma, die Scheinfüsschen oder Pseudopodien nach aussen hervor; meist bestehen sie zuerst aus hyalinem Protoplasma, in welches nach einiger Zeit Körnerplasma nachströmt. Dadurch vergrössern sich die Füsschen, breiten sich aus und können dann an ihrer Oberfläche wieder neue kleinere Füsschen hervortreiben. Oder sie werden auch durch Zurückfliessen des Protoplasma schwächer und schliesslich ganz eingezogen, während sich an einer anderen Stelle des Körpers neue Fortsätze bilden. Auf diese Weise führen die kleinen Protoplasmakörper durch Ausstrecken und Einziehen ihrer Pseudopodien Ortsveränderungen aus und bewegen sich auf unterliegenden Gegenständen, an deren Oberfläche sie anhaften, mit einer mikroskopisch messbaren Geschwindigkeit kriechend fort. Amöben können in einer Minute eine Wegstrecke von ½ mm zurücklegen.
Auf diese Weise wandern weisse Blutkörperchen bei Entzündungsprocessen durch die Wandung von Capillaren und kleineren Blutgefässen hindurch, bahnen sich die Lymphkörperchen als Wanderzellen in kleinen Gewebsspalten, wie in den Interlamellarlücken der Hornhaut, ihren Weg, wobei sie nicht unerhebliche Widerstände überwältigen müssen, oder drängen dicht aneinanderschliessende Epithelzellen auseinander und gelangen so an die Oberfläche von Epithelmembranen.
Mit am lebhaftesten erfolgt das Ausstrecken und Einziehen der Pseudopodien bei einer kleinen Amöbe (Fig. 38), welche schon Roesel von Rosenhof 1755 beschrieben und wegen ihres lebhaften Formenwechsels den kleinen Proteus genannt hat.
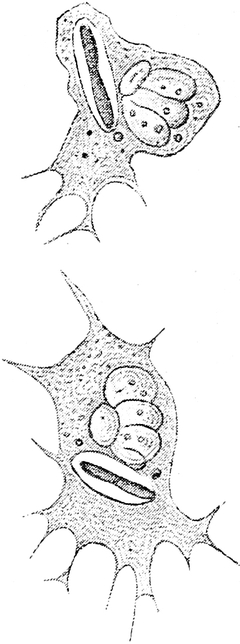
Fig. 37.
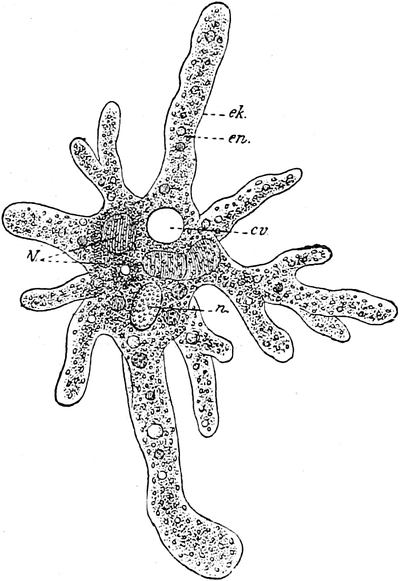
Fig. 38.
Fig. 37. Ein Leukocyt des Frosches, in dem ein Bakterium eingeschlossen ist und verdaut wird. Das Bakterium durch Vesuvin gefärbt. Die beiden Figuren repräsentiren 2 Stadien der Bewegung ein und derselben Zelle. Nach METSCHNIKOFF Fig. 54.
Fig. 38. Amöba proteus. Nach LEIDY. Aus R. HERTWIG Fig. 16. n. Kern. cv. Contractile Vacuole. N. Nahrungsballen. en. Körnerplasma. ek. Hautplasma.
Einen etwas abweichenden Anblick bietet uns die Protoplasmabewegung bei den Myxomyceten einerseits, bei Thalamophoren, Heliozoën, Radiolarien andererseits dar.
Um von Myxomyceten, deren Plasmodien sich bei einigen Arten, wie bei Aethalium septicum oft als faustgrosse Kuchen auf einer feuchten Unterlage ausbreiten, ein zur Beobachtung geeignetes Präparat zu erhalten, verfährt man am besten so, dass man an den Rand eines Plasmodiums einen schräg geneigten und befeuchteten Objectträger stellt, über dessen nasse Oberfläche man durch eine besondere Vorrichtung Wasser langsam herabrinnen lässt. Die Plasmodien des Aethaliums haben die Eigenschaft, sich dem Wasserstrome entgegen zu bewegen, (Rheotropismus); sie kriechen durch Ausstrecken zahlreicher Pseudopodien auf der benetzten Glasfläche in die Höhe und breiten sich, indem sich benachbarte Pseudopodien durch Queräste verbinden, zu einem feinen, durchsichtigen Netzwerk aus (Fig. 39). Bei starker Vergrösserung untersucht zeigt uns das Netzwerk zweierlei Arten von Bewegungen.
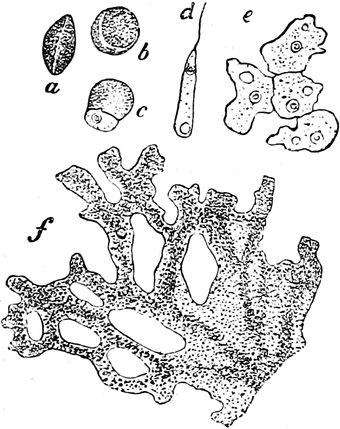
Fig. 39. Chondrioderma difforme.
Nach S
TRASBURGER
.
f
Theil eines älteren Plasmodiums.
a
trockene Spore.
b
Dieselbe im Wasser quellend.
c
Spore mit austretendem Inhalt.
d
Zoospore.
e
aus Umwandlung der Zoospore hervorgegangene Amöben, die sich zum Plasmodium zu vereinen anfangen. (Bei
d
und
e
Kern u. contractile Vacuolen zu sehen.)
Erstens sieht man in den Fäden und Strängen, die aus einer peripheren, oft sehr dünnen Lage von hyalinem Protoplasma und aus davon umschlossenem Körnerplasma bestehen, letzteres in einer raschen, fliessenden Bewegung, welche namentlich durch die Ortsveränderung der kleinen Körnchen auffällig wird und sich der Blutcirculation in den Gefässen eines lebenden Thieres vergleichen lässt. Zwischen fliessendem Körnerplasma und ruhendem Hautplasma besteht übrigens keine scharfe Grenze, indem am Rande eines Stromes die Körnchen sich langsamer fortbewegen, zuweilen auch ganz stille stehen, um nach einiger Zeit wieder mit fortgerissen zu werden. In feineren Fäden geht immer nur ein Strom der Länge nach, während in dickeren Aesten oft zwei Ströme in entgegengesetzten Richtungen aneinander vorbeifliessen. „In platten, hautartigen Ausbreitungen,“ welche sich hie und da im Netzwerk bilden, „laufen meistens zahlreiche verzweigte Ströme entweder nach der gleichen oder nach verschiedenen Richtungen, und nicht selten gehen entgegengesetzte Strömungen dicht neben einander her.“ Dabei kann die Geschwindigkeit der Strömung an den einzelnen Stellen eine verschiedene sein und kann sich auch allmählich ändern; sie kann so gross sein, dass man bei starker Vergrösserung den vorbeieilenden Körnchen kaum mit dem Auge folgen kann, kann aber auch so langsam werden, dass ein Körnchen kaum seinen Ort zu verändern scheint.
Die zweite Art der Bewegung besteht in einer Formveränderung der einzelnen Fäden und des ganzen Netzwerks. Wie bei einer Amöbe werden hie und da neue Fortsätze bald ausgestreckt, bald wieder eingezogen; wie dort wölbt sich erst eine homogene Plasmamasse als Höcker hervor, dann folgt das Körnerplasma nach, und sieht es hier zuweilen, wenn die Strömung eine recht lebhafte ist, aus, als werde die Körnermasse mit Gewalt in das sich neubildende Zweigende hineingepresst. Auf diese Weise kann sich das Plasmodium, einer Amöbe gleich, auf einer Unterlage nach einer bestimmten Richtung kriechend fortbewegen. An einem Rande, welchem die Körnerströme vorwiegend zufliessen, werden neue Fortsätze hervorgetrieben, während andere am entgegengesetzten Rande eingezogen werden.
Unter den Rhizopoden bietet die schon auf Seite 26 beschriebene Gromia oviformis (Fig. 40) ein klassisches Object zum Studium der Protoplasmabewegung. Von dem aus der Kapsel herausgetretenen Protoplasma entspringen, wenn der kleine Organismus nicht gestört worden ist, sehr zahlreiche, lange und feine Fäden, die sich in radiärer Richtung wie Strahlen nach allen Seiten im Wasser ausbreiten, hie und da Seitenäste abgeben und zuweilen auch durch solche netzförmig unter einander verbunden werden. Auch die feinsten Protoplasmafädchen zeigen Bewegung. Bei starker Vergrösserung sieht man, wie Max Schultze (I. 29) treffend beschreibt, „ein Gleiten, ein Fliessen der in die Fadensubstanz eingebetteten Körnchen“. „Mit grösserer oder geringerer Schnelligkeit ziehen sie in dem Faden entweder dem peripherischen Ende desselben zu oder in der umgekehrten Richtung, oft sogar selbst an den dünnsten Fäden in beiden Richtungen zugleich. Körnchen, die sich begegnen, ziehen entweder einfach aneinander vorbei oder bewegen sich umeinander, bis nach einer kleinen Pause beide ihre ursprüngliche Richtung fortsetzen oder eins das andere mit sich nimmt. Nicht alle Körnchen eines Fadens bewegen sich mit gleicher Schnelligkeit, so dass oft eins das andere überholt oder an dem langsameren in seiner Bewegung stockt. „Viele laufen offenbar an der äussersten Oberfläche der Fäden, über welche man sie deutlich hervorragen sieht. Oft bemerkt man auch grössere Substanzklümpchen wie spindelförmige Anschwellungen oder seitliche Auftreibungen eines Fadens in ähnlicher Bewegung wie die Körnchen. Selbst fremde Körper, welche der Fadensubstanz anhaften und in sie aufgenommen werden, schliessen sich dieser Bewegung an, deren Geschwindigkeit bis 0,02 mm in der Secunde erreichen kann. Wo mehrere Fäden zusammenstossen, sieht man die Körnchen von einem auf den andern übergehen. An solchen Stellen befinden sich oft breitere Platten, welche aus einer stärkeren Anhäufung der Fadensubstanz hervorgegangen sind.
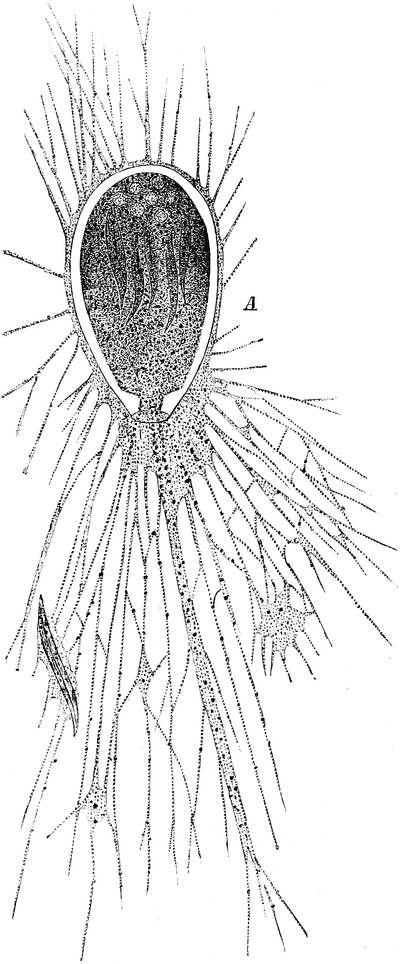
Fig. 40. Gromia oviformis.
Nach M. S
CHULTZE
.
Eine besondere Art der Protoplasmabewegung wird von Engelmann (III. 5 u. 7) noch als Glitschbewegung beschrieben. Sie findet sich besonders bei Diatomeen und Oscillarien. Bei ersteren ist der Protoplasmakörper in eine Kieselschale, bei letzteren in eine Cellulosemembran eingehüllt. Nach aussen von diesen Hüllen findet sich aber noch eine äusserst dünne Schicht von ganz körnchenfreiem Protoplasma, welches beim lebenden Organismus nicht wahrzunehmen ist, zuweilen aber nach Anwendung von Reagentien nachgewiesen werden kann. Dadurch, dass sich nun dieselbe auf der Kieselschale oder der Cellulosemembran nach einer bestimmten Richtung verschiebt, können sich die kleinen Organismen „auf einer festen Unterlage gleitend oder kriechend fortbewegen.“ (Engelmann.)
b) Bewegung von Protoplasmakörpern im Innern von Zellmembranen.
Diese Art der Bewegung findet sich hauptsächlich im Pflanzenreich und ist hier im Allgemeinen in den Elementartheilen krautartiger Gewächse besser zu beobachten als bei Sträuchern und Bäumen. Nach de Vries (III. 25) soll sie in keiner Pflanzenzelle ganz fehlen, aber häufig so langsam sein, dass sie sich der directen Wahrnehmung entzieht. Am besten beobachtet man sie in stoffaufspeichernden und leitenden Geweben und zu jenen Zeiten, wo ein intensiver Transport plastischer Stoffe, sei es zur Fortbildung oder zu localer Anhäufung oder zu eigenem Gebrauch stattfindet (de Vries). Die Protoplasmabewegung soll daher auch direct für den Stofftransport in der Pflanze von grosser Bedeutung sein. Seltener ist sie bei niederen Organismen und im Thierreich zu bemerken, so bei Noctiluken, an den blasigen Zellen in der Axe der Tentakeln von Coelenteraten etc.
Man unterscheidet bei den Pflanzen zwei verschiedene Arten der Bewegung als Rotation und als Circulation.
Die schönsten Objecte zum Studium der Rotation, die schon im Jahre 1774 durch Bonaventura Corti (I. 8) beobachtet, dann aber vergessen und von Treviranus wieder aufs Neue entdeckt wurden, liefern uns die Characeen, ferner die Wurzelhaare von Hydrocharis morsus ranae und Trianea bogotensis, die Blätter von Vallisneria spiralis etc. In den grossen Zellen der Characeen breitet sich das Protoplasma, wie schon auf Seite 29 beschrieben wurde, nur als eine zusammenhängende dicke Lage an der Innenfläche der Cellulosemembran aus und umgiebt als ein geschlossener Sack den reichlichen Zellsaft. Am wandständigen Protoplasma sind stets zwei gesonderte Schichten zu erkennen, eine äussere, an die Cellulose grenzende und eine innere, dem Zellsaft zugekehrte. Die erstere befindet sich stets in Ruhe; sehr dünn ist sie bei Hydrocharis, relativ dick bei Characeen, bei denen sie auch in grosser Zahl die Chlorophyllkörner einschliesst, an denen man keine Ortsveränderung wahrnimmt. Die ruhende geht allmählich in die innere bewegliche Schicht über, die bei Chara zwar keine Chlorophyllkörner, aber Zellkerne und Körnchen einschliesst. Das im Verhältniss zur Aussenschicht wahrscheinlich wasserreichere Protoplasma der Innenschicht zeigt eine rotirende Strömung in der Weise, dass in den langgestreckten Zellen der Strom an der einen Längswand in die Höhe steigt, dann an der oberen Querwand nach der anderen Längswand umbiegt, an dieser nach abwärts fliesst und endlich an der unteren Querwand wieder zum Ausgangspunkt zurückgelangt, von wo der Kreislauf wieder von Neuem beginnt. Zwischen auf- und absteigendem Strom befindet sich ein mehr oder minder breiter Indifferenzstreifen, in dessen Bereich sich das Protoplasma in Ruhe befindet und gewöhnlich auf eine sehr dünne Schicht reducirt ist. Bei Nitella fehlen längs des Indifferenzstreifens die Chlorophyllkörner in der Aussenschicht.
Ein Uebergang von der rotirenden Bewegung des Protoplasma zur Circulation wird durch die „sogenannte springbrunnenartige Rotation vermittelt“ (Klebs. III. 14). Diese im Allgemeinen seltene Form kommt in jungen Endospermzellen von Ceratophyllum, in jungen Holzgefässen des Blattstiels von Ricinus etc. vor. Hier bedeckt das Protoplasma einmal als dicke Schicht die Innenfläche der Cellulosewand, durchsetzt aber ausserdem noch als ein dicker, centraler Strang den Saftraum der Zelle ihrer Länge nach. Ein einziger Strom fliesst nun im centralen Strang entlang, breitet sich dann an der Querwand, auf die er stösst, nach allen Seiten wie bei einer Fontäne aus und bewegt sich von hier im Wandbeleg zur entgegengesetzten Querwand, an welcher die Strömung wieder in den Axenstrom einbiegt.
Die als Circulation bezeichnete Bewegung beobachtet man bei solchen pflanzlichen und thierischen Zellen, bei denen das Protoplasma sich sowohl als dünne Schicht unter der Membran, als auch in feineren und stärkeren, netzartig verbundenen Fäden im Saftraum ausbreitet.
Die am meisten studirten Untersuchungsobjecte sind die Staubfadenhaare von den verschiedenen Tradescantiaarten, die jungen Haare von Brennnesseln und Kürbissprossen.
Das Phänomen der Circulation ist ein ähnliches, wie wir es an dem Protoplasmanetz der Myxomyceten und den feinen Pseudopodien der Rhizopoden kennen gelernt haben. Es setzt sich wie dort aus zwei Arten von Bewegungen zusammen. Einmal unterscheidet man die Körnchenströmung. In den feinsten Fäden bewegen sich die Körnchen nach einer Richtung bald langsamer, bald rascher vorwärts; im Wandbeleg und in den breiteren Bändern circuliren oft mehrere getrennte Ströme dicht neben einander, bald in der gleichen, bald auch in entgegengesetzter Richtung. Chlorophyll- und Stärkekörner, die in dem Protoplasma liegen, werden durch die Strömung ebenso wie der Zellenkern langsam mitgeführt. Auch hier befindet sich eine äusserste, der Cellulosemembran anliegende Schicht von hyalinem Protoplasma in relativer Ruhe. Zweitens bewegt sich auch langsam der Protoplasmakörper im Ganzen und verändert in Folge dessen seine Form. Breite Bänder werden verdünnt, und können nach einiger Zeit ganz eingezogen werden, feine Fäden nehmen an Masse zu, neue Fortsätze bilden sich, wie neue Pseudopodien von Myxomyceten oder Rhizopoden nach aussen hervorgestreckt werden. Bald haben sich hier, bald dort im Wandbeleg grössere Protoplasmamassen angehäuft, während an andern Stellen Verdünnung eingetreten ist.
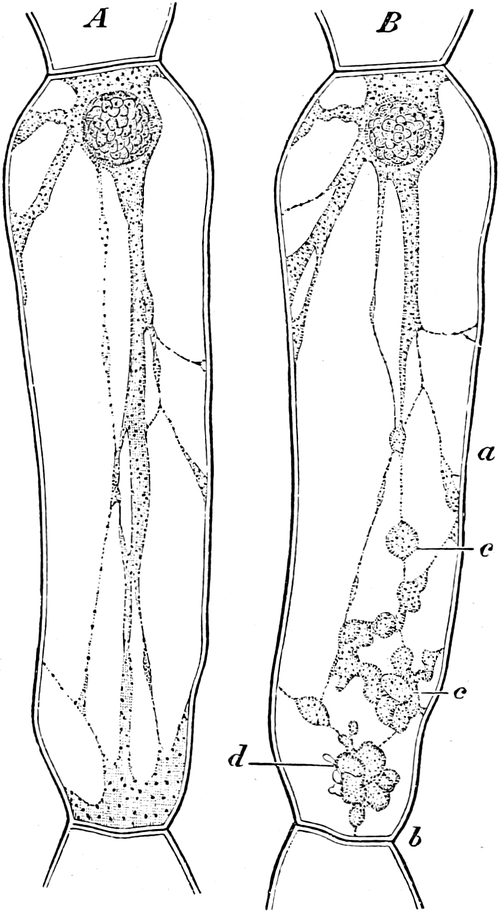
Fig. 41.
A
u.
B
Zelle eines Staubfadenhaares von Tradescantia virginica.
A
Ungestörte Protoplasmaströmung.
B
Protoplasma nach Reizung kugelig zusammengeballt.
a
Zellwand,
b
Querwand zweier Zellen,
c
,
d
Protoplasma zu Klumpen zusammengeballt. (Nach K
ÜHNE
.) Aus V
ERWORN
Fig. 13.
c) Erklärungsversuche der Protoplasmabewegung.
Von verschiedenen Forschern [Quincke (III. 17), Bütschli (II. 7b), Berthold (III. 2) u. A.] ist in letzter Zeit der Versuch gemacht worden, die Protoplasmabewegung mit Bewegungserscheinungen, welche Gemische unorganisirter Substanzen darbieten, zu vergleichen und aus ihnen zu erklären.
Quincke hat die Bewegungserscheinungen, die an den Berührungsflächen verschiedener Flüssigkeiten entstehen, genauer untersucht. Er brachte einen Tropfen eines Oelgemisches, dessen specifisches Gewicht ein wenig grösser als das des Wassers war und welches aus Mandelöl und Chloroform hergestellt wurde, in ein Glas mit Wasser und liess darauf durch ein feines Capillarröhrchen einen Tropfen zweiprocentiger Sodalösung an die Oelkugel herantreten. Dieselbe erfuhr hierauf Gestaltveränderungen ähnlich denen, welche gewisse Amöben bei mikroskopischer Beobachtung zeigen. Dieselben erklären sich dadurch, dass die Sodalösung sich allmählich über die Oeloberfläche ausbreitet und dabei eine Seife bildet.
In analoger Weise beurtheilt Quincke das Wesen der Protoplasmabewegung. Bei der Plasmolyse von Pflanzenzellen zerfällt ihr Protoplasmakörper zuweilen in zwei oder mehr Kugeln, die sich beim Ausdehnen entweder wieder vereinigen oder durch eine ebene Fläche getrennt bleiben, wie zwei gleich grosse Seifenblasen, die man miteinander in Berührung bringt. Aus diesen Erscheinungen wird mit Rücksicht auf die physikalischen Eigenschaften fester und flüssiger, dünner Lamellen geschlossen, dass der Protoplasmakörper von einer sehr dünnen, flüssigen Membran umgeben sein müsse, ähnlich wie bei einer Seifenblase die Luft von einer dünnen Haut aus Seifenwasser eingeschlossen ist. „Die Substanz der den Plasmakörper umgebenden Membran,“ so folgert Quincke weiter, „muss eine Flüssigkeit sein, welche im Wasser Tropfen bildet. Da von allen bekannten Stoffen der organischen Natur nur Oele diese Eigenthümlichkeit zeigen, so muss sie aus fettem Oel oder flüssigem Fette bestehen. Die Dicke dieser Oelschicht kann sehr gering sein, kleiner als 0,0001, so dass man sie mikroskopisch nicht mehr wahrnehmen kann.“ Durch die Einwirkung des Eiweisses auf das Oel entsteht an ihren Berührungsflächen eine Substanz, die sich in Wasser löst und ausbreitet, ähnlich wie die aus Soda und Oel gebildete Seife. Sie wird daher als Eiweissseife bezeichnet.
Die Ursache für die Protoplasmabewegung erblickt nun Quincke in der periodischen Ausbreitung von Eiweissseife an der inneren Oberfläche der Oelhaut, welche den Plasmakörper einhüllt. Die Seife wird an der Berührungsfläche in demselben Maasse immer wieder neugebildet, als sie gelöst wird und in die umgebende Flüssigkeit diffundirt. Daraus, dass für den chemischen Vorgang die Gegenwart von Sauerstoff nothwendig ist, erklärt es sich, dass bei Fehlen desselben die Protoplasmabewegung stockt, desgleichen erklärt sich aus den chemisch-physikalischen Bedingungen ihr Stillstand bei zu hohen und zu niedrigen Temperaturen.
Angeregt durch Quincke’s Untersuchungen und ausgehend von der Annahme einer schaumigen Structur des Protoplasma, nahm Bütschli einige interessante Experimente vor, welche ihm Licht auf die Ursachen der Protoplasmabewegung zu werfen schienen. Er stellte sich in verschiedener Weise Oelschäume her. Die feinsten und lehrreichsten Schäume erhielt er, wenn er einige Tropfen Olivenöls, das im Wärmeschrank eingedickt worden war, mit sehr fein pulverisirtem K2CO3 zu einem zähen Brei vermischte und ein kleines Tröpfchen desselben in Wasser brachte. Der entstehende Schaum, dessen sehr kleine Vacuolen mit einer sich bildenden Seifenlösung gefüllt sind, sieht milchweiss aus; durch Zusatz von dünnem Glycerin lässt er sich aufhellen. Dabei treten lebhafte Strömungen auf, die volle 6 Tage an einem gelungenen Präparate im Gang bleiben und den Protoplasmabewegungen einer Amöbe ausserordentlich gleichen. „Nach einer Stelle des Randes zog der Strom durch die Axe des Tropfens hin, floss dann vom Rande nach beiden Seiten und hinten ab, um allmählich wieder in den centralen Strom einzutreten.“ „Bald hier, bald dort wird ein flacher Fortsatz hervorgeschoben, wieder zurückgezogen und so fort, ja manchmal gerathen einzelne Tropfen auf einige Zeit in ziemlich lebhafte Ortsbewegung.“ Bütschli erklärt nach den Versuchen von Quincke die Bewegungsphänomene in der Weise, dass „an irgend einer Stelle der Oberfläche einige feine Schaumwaben platzen, und dass an dieser Stelle Seifenlösung an die Oberfläche des Tropfens tritt, welche von einer ganz dünnen Oellamelle gebildet wird. Die Folge hiervon muss eine Herabsetzung der Oberflächenspannung an dieser Stelle und daher ein schwaches Vorwölben derselben und Abströmen von ihr sein. Beides veranlasst, dass Schaummasse von innen zu dieser Stelle strömt. Bei diesem Zustrom zur Ausbreitungsstelle dürften wieder einige Maschen platzen und so fort, so dass die einmal angeregte Strömung an dieser Stelle fortdauert, wenn nicht erhebliche Störungen auftreten.“ Bütschli ist von der principiellen Uebereinstimmung der Strömungen in den Oelschaumseifetropfen mit der amöboiden Protoplasmabewegung überzeugt.
Die von Quincke und Bütschli angestellten Experimente sind von hohem Interesse, insofern sie zeigen, dass sich mit relativ einfachen Mitteln schon complicirte Bewegungsphänomene hervorrufen lassen. Gegen ihre Schlussfolgerung aber, dass bei der Protoplasmabewegung ähnliche Vorgänge stattfinden, lassen sich wohl verschiedenartige Bedenken erheben. Schon die Annahme, dass der Protoplasmakörper von einer feinen Oellamelle überzogen sei, ist eine sehr fragwürdige. Aus der Thatsache allein, dass das Protoplasma sich aus sehr vielen chemischen Stoffen zusammensetzt, die fortwährend im Stoffwechselprocess, auf dem das Leben beruht, chemisch-physicalische Veränderungen erfahren, dürfen wir schliessen, dass die Bedingungen für die Bewegungen viel complicirterer Art sein werden, als in einem sich bewegenden Tropfen von Oelschaumseife, und zwar in demselben Maasse, als chemische Zusammensetzung und Organisation der beiden in Vergleich gezogenen Objecte eine himmelweit verschiedene ist. (Vergleiche auch hierüber das auf Seite 20 Gesagte, und Verworn: Die Bewegung der lebendigen Substanz (III. 24). Ferner bilden Protoplasmaströmung, radiäre Anordnung um Attractionscentren, Flimmer- und Geisselbewegung, Muskelcontraction eine Gruppe zusammengehöriger Vorgänge, die eine einheitliche Erklärung verlangen. Eine solche können nun weder die von Quincke noch die von Bütschli angestellten Experimente geben. Die von ihnen an Stoffgemischen hervorgerufenen Bewegungen verhalten sich zu den Bewegungen der lebendigen Körper, wie die Structur der von Traube erzeugten künstlichen Zellen zu der Structur der lebendigen Zellen.
Um zu zeigen, wie schon durch einfache Ausbreitung eines Oeltropfens auf wässerigen Lösungen sehr verschiedenartige Bilder entstehen, welche den einzelnen Arten von Pseudopodienausbreitung sehr ähnlich sehen, diene Figur 42, welche einer Schrift von Verworn (III. 24) entnommen ist. a-d „ist ein Tröpfchen Provenceröl, das sich auf einer schwachen Sodalösung von verschiedener Concentration ausbreitet und bei a die Form von Amöba guttula, bei b und c die Form von Amöba proteus, bei d die Form eines Myxomycetenplasmodiums zeigt. Fig. 42 e und f ist Mandelöl, das heliozoën- und radiolarienähnliche Pseudopodienbildung besitzt, und Fig. 42 g ist ein aus Lehmanns Molecularphysik übernommenes Bild eines Kreosottropfens auf Wasser, der ein typisches Actinosphärium nachahmt. (III. 24. Seite 47.)“
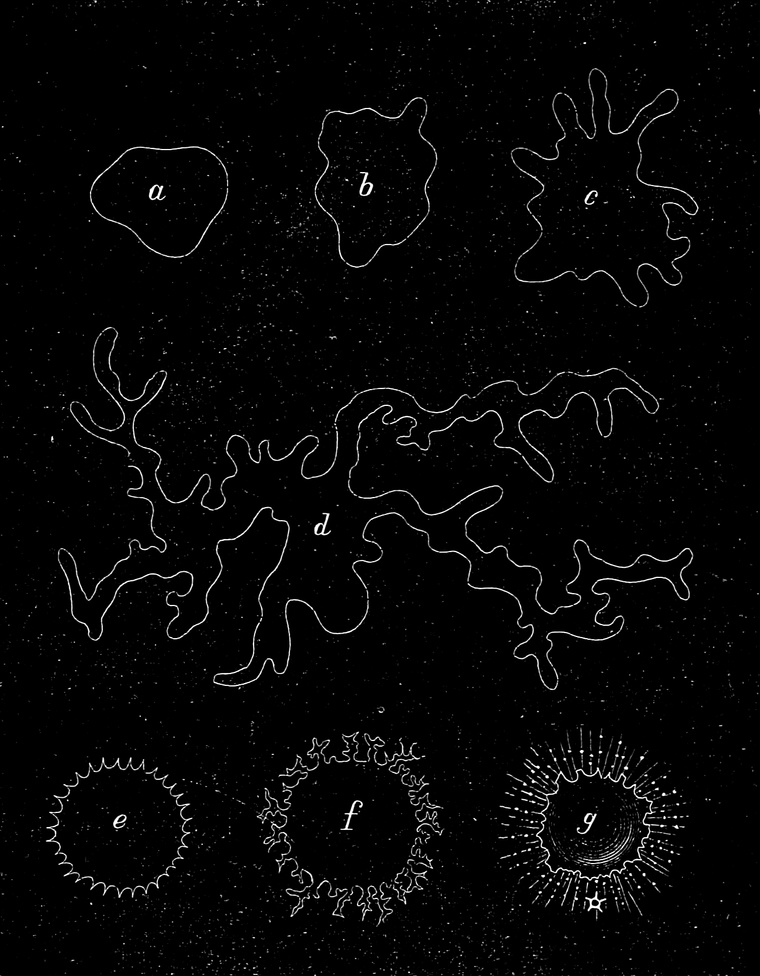
Fig. 42. Ausbreitungsformen von Oeltropfen.
Nach V
ERWORN
Fig. 11.
Andere Versuche, die Protoplasmabewegungen zu erklären [Engelmann (III. 6), Hofmeister (II. 20) Sachs], führen uns auf das Gebiet der Theorieen über die Molecularstructur der organisirten Körper, indem als Ursache der Bewegungen die active Formveränderung kleinster Theilchen angenommen wird. Wieder nach einer anderen Richtung bewegt sich der jüngste Erklärungsversuch von Verworn (III. 24). Eine Erörterung derselben würde uns zu weit führen.
Alles in Allem lässt sich wohl von allen bisher aufgestellten Hypothesen sagen, dass keine uns eine befriedigende Vorstellung von den Ursachen und mechanischen Verhältnissen der Plasmabewegungen zu geben vermag, und dass wir uns daher noch auf eine einfache Beschreibung der beobachteten Verhältnisse beschränken müssen. Auch ist dies kaum zu verwundern, wenn wir erwägen, wie schon über die feinere Structur des Protoplasma (Siehe Seite 17–23) so sehr abweichende Ansichten bestehen, was natürlich auch auf die Erklärung der Protoplasmabewegung von Einfluss sein muss.
II. Die Geissel- und Flimmerbewegung.
Bedeutendere Ortsveränderungen als durch Ausstrecken von Pseudopodien erzielen einzellige Organismen durch die Geissel- und Flimmerbewegung.
Geisseln und Flimmern sind feine, haarartige Fortsätze, die sich in geringerer oder grösserer Anzahl von der Oberfläche der Zelle erheben. Sie bestehen aus einer homogenen, körnchenfreien Substanz und gleichen in dieser Beziehung kurzen, dünnen Pseudopodien, wenn diese nur aus Hyaloplasma gebildet sind; sie unterscheiden sich aber von ihnen einmal durch die verschiedene und energischere Art ihrer Bewegung und zweitens dadurch, dass sie nicht vergängliche Gebilde sind, da sie dauernd in Funktion bleiben, ohne aus- und eingezogen zu werden. An der Wurzel hängen indessen Flimmer- und Pseudopodienbewegung zusammen, wie die Beobachtungen von de Bary (I. 2) an Schwärmern von Myxomyceten, von Haeckel, Engelmann, R. Hertwig (III. 12b) etc. an Rhizopoden gelehrt haben.
Viele niedere Organismen pflanzen sich nämlich durch kleine Keime fort, die wie Amöben aussehen und sich auch nach Art derselben fortbewegen. (Fig. 43.) Solche Keime strecken nun nach einiger Zeit gewöhnlich zwei fadenartige Pseudopodien hervor (Fig. 43 a), die langsam pendelnde Bewegungen ausführen und zu Geisseln werden, während der übrige Körper sich durch Einziehen aller übrigen Fortsätze abrundet. Indem die Bewegungen stärker werden, eilt der Keim mit Hülfe der beiden Geisseln im Wasser fort (Fig. 43 b.) Aus der kleinen Amöbe ist ein „Schwärmer“ geworden.
Auf solche Befunde gestützt, können wir wohl sagen, dass sich die Geisseln aus feinen Protoplasmafortsätzen entwickelt haben, die in besonderem Maasse contractil geworden sind und dementsprechend eine vom übrigen Protoplasma etwas abweichende Beschaffenheit gewonnen haben. Sie können daher auch als besondere, aus contractiler Substanz bestehende Plasmaproducte oder Zellorgane betrachtet werden.
Geisseln und Flimmern nehmen immer direct vom Zellkörper selbst ihren Ursprung. Ist dieser von einer Membran umgeben, so treten sie durch Poren derselben hindurch. An ihrer Basis sind sie immer etwas dicker, beginnen oft an der Oberfläche des Protoplasma mit einem kleinen, knopfartigen Ansatzstücke, nach dem freien Ende zu verjüngen sie sich allmählich zu einer feinen Spitze.
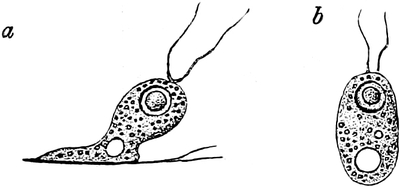
Fig. 43. Microgromia socialis.
Eine durch Theilung entstandene, aus der Kolonie ausgewanderte amöboide Zelle (
a
) wandelt sich durch Einziehen der Pseudopodien mit Ausnahme zweier, welche zu Geisseln werden, in den Schwärmer (
b
) um. Aus H
ERTWIG
Taf. I. Fig. 6
d
u.
e
.
Die Flimmerorgane finden sich entweder nur in geringer Anzahl (1–4) an einem Ende der Zelle, sie sind dann meist länger und kräftiger und werden mit einem besonderen Namen als Geisseln oder Flagellen bezeichnet, oder sie bedecken in sehr grosser Anzahl, oft zu Tausenden, die ganze Oberfläche der Zelle, sind dann kleiner und zarter und heissen Flimmern (Wimpern, Cilien).
a) Zellen mit Geisseln.
Die Geisseln sind entweder am vorderen oder am hinteren Ende des Körpers angebracht, was eine verschiedene Art der Fortbewegung zur Folge hat. Im ersteren Fall gehen die Geisseln bei der Bewegung voran, während der Körper nachgeschleppt wird. Im zweiten Fall stösst die Geissel durch ihre Bewegungen den Körper vor sich her. Das eine findet sich hauptsächlich bei den Flagellaten und verwandten Organismen, (Fig. 44 A. B. C.) manchen Bakterienformen (Fig. 33. B), den pflanzlichen Samenfäden (der Moose, Farne, Equisetaceen), sowie bei den Schwärmsporen, unter welchem Namen die Fortpflanzungskörper vieler Algen und mancher Pilze zusammengefasst werden; das zweite zeigt sich bei den Samenfäden der meisten Thiere. (Fig. 45.)
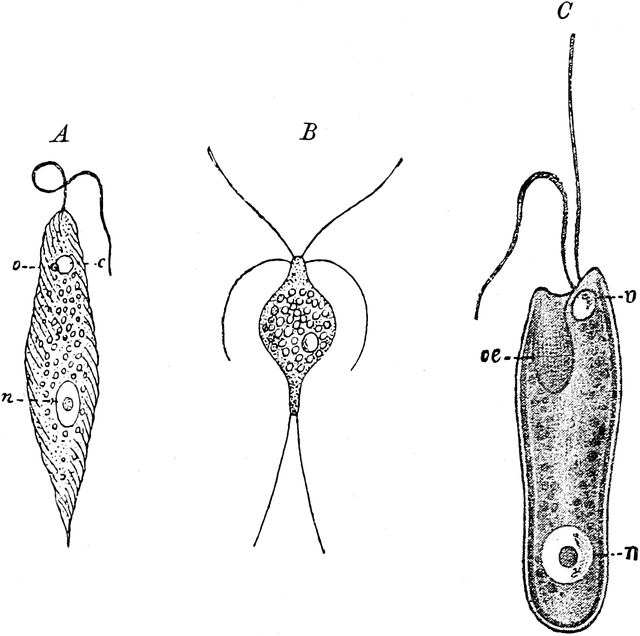
Fig. 44.
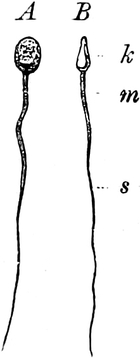
Fig. 45.
Fig. 44. A Euglena viridis. Nach STEIN. n Kern. c Contractile Vacuole. o Pigmentfleck.
B Hexamitus inflatus. Nach STEIN.
C Chilomonas Paramaecium. Nach BÜTSCHLI. oe Cytostom. v Contractile Vacuole. n Kern. Aus R. HERTWIG Fig. 130–132.
Fig. 45. Reife Samenfäden des Menschen in zwei verschiedenen Ansichten. Dieselben bestehen aus Kopf (k), Mittelstück (m) und Schwanz (s).
Die Arbeitsleistung, welche die Flimmerorgane einzelliger Organismen bei der Fortbewegung derselben zu erfüllen haben, ist eine doppelte. Erstens muss durch ihre Thätigkeit der Zellkörper im Wasser schwebend erhalten werden, da sein specifisches Gewicht etwas grosser als das des umgebenden Mediums ist. Es geht dies ja schon einfach aus dem Umstande hervor, dass sich todte Schwärmsporen und Samenfäden bald am Boden des Gefässes niedersetzen. Zweitens muss durch die Flimmerarbeit der Körper in bestimmter Richtung fortgetrieben werden.
Mit der Mechanik der Bewegung pflanzlicher Schwärmzellen hat sich Nägeli (III. 16) am eingehendsten beschäftigt. Nach diesem Forscher wird durch die Schwingungen der Geisseln dem Körper eine zweifache Bewegung mitgetheilt, ein Vorrücken und eine gleichzeitige Drehung um seine eigene Axe. Die Bewegung ist daher eine ähnliche, wie von einer Kugel, die aus einem gezogenen Flintenlauf abgeschossen wird. Dabei lässt dieselbe drei verschiedene Typen unterscheiden:
„An vielen Schwärmzellen, sie mögen in einer geraden oder etwas gebogenen Linie vorwärts gehen, bleiben das vordere und das hintere Ende ihrer Axe genau in dieser Bahn; sie schwimmen steif und ohne Schwanken vorwärts. An anderen sieht man deutlich, dass sie eine gerade oder etwas gebogene Schraubenlinie beschreiben, wobei eine Drehung um die Axe immer einem Umlauf der Schraube entspricht (sodass also die nämliche Zellseite stets nach aussen gekehrt ist), und wobei ihre Axe mit der Axe der Schraubenbahn parallel läuft. Endlich giebt es noch andere Schwärmzellen, deren vorderes Ende in einer Schraubenlinie, deren hinteres aber in einer geraden Linie oder in einer Schraube von geringerem Durchmesser vorwärts geht. Die Natur der zweiten und dritten Bewegung erkennt man nur ganz deutlich, wenn sie langsam stattfinden. Sowie sie schneller werden, erkennt man nur ein Schwanken, das besonders bei der letzteren einen eigenthümlichen Charakter hat.“
Die Richtung, in welcher sich die Schwärmzellen um ihre Längsachse drehen, ist gewöhnlich für jede Art, Gattung oder Familie constant; manche drehen sich „südwestlich“ (Ulothrix), andere „südöstlich“ (Samenfäden der Farne), einige endlich sind drehungsvage, da sie sich bald südöstlich, bald südwestlich drehen (Gonium). Wenn Schwärmzellen an irgend einen Gegenstand anstossen, so hören sie eine Zeit lang auf, sich vorwärts zu bewegen, fahren aber fort, sich um ihre Längsaxe zu drehen. Dann „erfolgt meist ein Zurückweichen, wobei sie mit dem hintern Ende vorangehen und sich in absteigend-entgegengesetzter Richtung drehen. Diese Rückwärtsbewegung dauert meist nur kurze Zeit und ist immer langsamer; sie wird bald wieder durch die normale Bewegung vertauscht, die meist in einer etwas abgelenkten Richtung erfolgt.“
Durch seine Beobachtungen ward Nägeli zu der Annahme geführt, „dass die Schwärmzellen und Samenfäden bei vollkommen regelmässiger Form, bei symmetrischer Vertheilung der Masse und bei Homogeneïtät des Mediums in einer geraden Linie dahinschwimmen würden, — und dass alle Abweichungen, sowohl rücksichtlich der Axendrehung, als der Fortbewegungsbahn davon herrühren, dass die beweglichen Körper nicht symmetrisch gebaut sind, ihren Schwerpunkt nicht im Centrum haben und nicht ringsum gleichmässige Reibungswiderstände erfahren“.
Mit Hülfe der Geisseln wird eine viel raschere Fortbewegung als durch das Kriechen mit Pseudopodien erzielt. Nach Nägeli gebrauchen die Schwärmzellen, um den Weg von 1 Fuss zu durchlaufen, gewöhnlich eine Stunde, die schnellsten bloss ¼ Stunde. Während der Mensch während einer Secunde beim gewöhnlichen Gehen etwas mehr als die Hälfte seiner Länge zurücklegt, beträgt der von einer Schwärmspore in derselben Zeit durchmessene Raum nicht ganz das Dreifache ihres Durchmessers. Wenn unter dem Mikroskop uns die Bewegung eine sehr lebhafte zu sein scheint, so muss man sich vergegenwärtigen, dass dieselbe, der angewandten Vergrösserung entsprechend, schneller erscheint, als sie in Wahrheit ist, da ja der durchlaufene Weg auch vergrössert worden ist. Die Fortbewegung ist eine absolut geringe. „Ohne Vergrösserung würde man, auch wenn die Organismen vollkommen deutlich wären, ihre Bewegung wegen der Langsamkeit nicht sehen.“
Thierische Samenfäden (Fig. 45) unterscheiden sich dadurch von den pflanzlichen Schwärmzellen, dass der einfache Geisselfaden am hinteren Ende des Körpers angebracht ist und so denselben vor sich hertreibt. Der Faden führt dabei schlängelnde Bewegungen aus in ähnlicher Weise, wie der Körper mancher Fische. In einigen Fällen besitzt er noch eine complicirtere Structur, indem er mit einer feinen contractilen oder undulierenden Membran besetzt ist. Letztere ist dem Flossensaum eines Fisches vergleichbar; sie findet sich besonders schön am Schwanztheile der grossen Samenfäden von Salamandra und Triton entwickelt (Fig. 46).
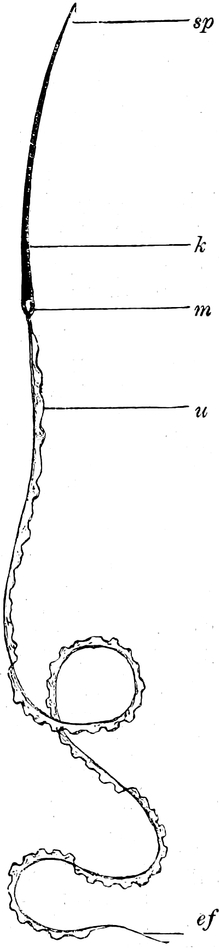
Fig. 46. Samenfaden von Salamandra maculata.
k
Kopf.
m.
Mittelstück.
ef
Endfaden.
sp.
Spitze.
u
undulirende Membran.
Bei Untersuchung derselben vermittelst stärkerer Vergrösserungen sieht man über die Oberfläche der undulirenden Membran fortwährend von vorn nach hinten fortschreitende Wellen verlaufen. „Dieselben entstehen,“ wie Hensen auseinandersetzt, „dadurch, dass successive jeder Querschnitt des Schwanzes in die beiden extremen Stellungen (Fig. 47) übergeht. Hat das von oben gesehene Stück des Saumes I bis I1 (Fig. 47) zur Zeit 0 die angegebene Lage, so wird es am Ende des ersten Viertels der Periode die Stellung II bis II1 oder, was dasselbe ist, die Stellung II1 bis II2 einnehmen. Am Ende des zweiten Viertels ist II1 bis II2 in die Lage III bis III1 oder, was dasselbe ist, in III1 bis III2 übergegangen. Am Ende des dritten Viertels der Periode ist dann III1 bis III2 in die Lage IV bis IV1 übergegangen und wird am Ende der ganzen Periode wieder die Stellung I bis I1 einnehmen. Alle diese Bewegungen erfolgen mit einer gewissen Kraft und Geschwindigkeit; es fragt sich, wie daraus eine Vorwärtsbewegung entstehen kann? Ein Flächenelement des Saumes (Fig. 47) bewegt sich, wie der Pfeil angiebt, von α nach γ mit der Kraft κ = αγ. Diese Kraft kann zerlegt werden in die Componenten αβ und βγ. Die Kraft αβ drückt in der Richtung des Saums, comprimirt ihn und giebt wahrscheinlich keinen äusseren Effect. Die Kraft βγ lässt sich weiter zerlegen in γδ und γε. γε treibt das Wasser gerade nach rückwärts, und insoweit dieses dem Druck widersteht, treibt das Körperchen nach vorwärts. Die Kraft γδ würde das Körperchen um die eigene Axe rotiren machen, doch ihr wirkt die gleiche, aber entgegengesetzte Kraftcomponente entgegen, welche an allen Orten sich entwickelt, wo die Pfeile in entgegengesetzter Richtung (also z. B. über D) verlaufen. Im Uebrigen giebt Fig. D dieselbe Kraft γε wie Fig. C. Nur die schraffirten Flächen der Fig. A entwickeln der Componente γε entgegengesetzte Kräfte. Man sieht aber, dass die Grösse der betreffenden Flächen und damit ihre Kraftcomponenten durchaus zurücktreten“ (Hensen III. 11).
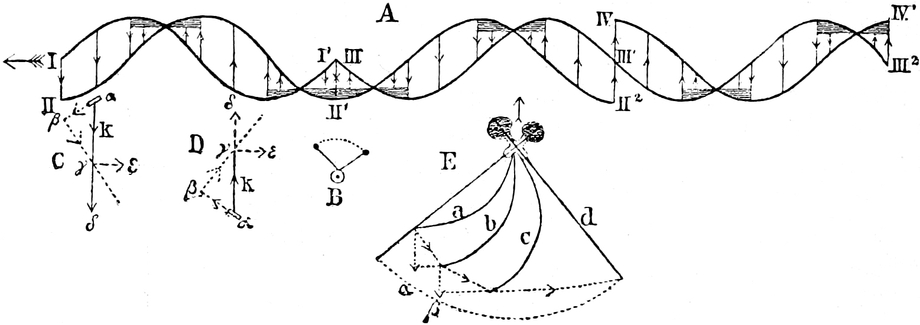
Fig. 47. Zur Erklärung des Mechanismus der Samenbewegung.
Nach H
ENSEN
Fig. 22.
A
Die vier Phasen der Stellung, welche der Wimpersaum einnimmt, wenn eine Welle über ihm hinläuft. I bis I
1
die erste, II bis II
1
bis II
2
die zweite, III bis III
1
bis III
2
die dritte, IV bis IV
1
die vierte Phase der Biegung des Saums in der Länge einer Welle.
B
Durchschnitt des Schwanzfadens und Saums in den zwei Stellungen stärkster Elongation.
C
und
D
Zerlegung der Kräfte des Saums.
E
Bewegung eines gewöhnlichen Samenkörperchens.
a
b
c
verschiedene Phasen der Bewegung.
b) Zellen mit vielen Flimmern.
Durch reichliche Bewimperung zeichnen sich unter den niederen, einzelligen Organismen besonders die Infusorien aus, die deswegen auch den Namen der Ciliaten führen (Fig. 48). Im Vergleich zu den Geisseln sind die Cilien, Flimmern oder Wimpern von viel geringerer Grösse, meist circa 0,1–0,3 μ dick und etwa 15 μ lang. Ihre Zahl kann sich auf mehrere Tausende belaufen. So wurde sie bei Paramaecium aurelia auf annähernd 2500 berechnet. Für das parasitische Balantidium elongatum der Frösche, welches eine Länge von 0,3 erreicht und sehr dicht bewimpert ist, nimmt Bütschli (III. 3) an, dass seine Cilien wohl nach Zehntausenden geschätzt werden müssen. Gewöhnlich sind dieselben in vielen Längsreihen angeordnet, die entweder nur auf einen Theil der Körperoberfläche beschränkt sind oder dieselbe in spiralen Touren rings umziehen.
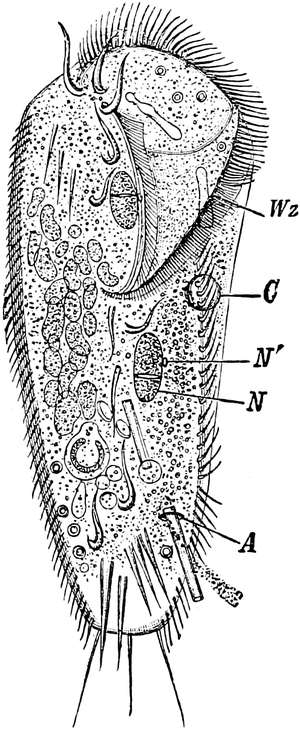
Fig. 48. Stylonychia mytilus
, nach S
TEIN
(aus C
LAUS
, Zoologie)
von der Bauchfläche gesehen
.
Wz
adorale Wimperzone.
C
Contractile Vacuole.
N
Nucleus.
N
1
Nucleolus.
A
After.
Neben den Cilien kommen bei vielen Infusorien noch besondere grössere Bewegungsorgane vor, die Cirren und die undulirenden Membranen. Erstere unterscheiden sich von den Cilien durch grössere Dicke und Länge und dadurch, dass sie an der Basis breit entspringend in eine feine Spitze auslaufen (Fig. 48). Ferner zeigen sie wie andere besonders contractile Gewebe (Muskelfasern) eine fibrilläre Differenzirung, sodass sie sich in viele feine Fibrillen zerfasern lassen (Bütschli). Cirren treten besonders häufig bei hypotrichen Infusorien und in der Umgebung der Mundöffnung auf. Auf letztere sind auch die undulirenden Membranen in ihrer Ausbreitung beschränkt. Sie sind flächenartig entwickelte Bewegungsorgane, welche häufig von der Basis gegen den freien Rand zu deutlich fein gestreift sind und daher wohl ebenfalls wie die Cirren eine fibrilläre Structur besitzen.
Die Bewegungsweise der Infusorien ist eine sehr mannichfaltige. Meist dreht sich ihr Körper, wenn er sich frei durch das Wasser bewegt, um seine Längsaxe. Die Richtung der Bewegung kann wechseln, die Thätigkeit der Wimpern kann plötzlich verlangsamt, plötzlich beschleunigt werden, sie kann auch kurze Zeit still stehen ohne besondere äussere Veranlassung. So kommen verschiedenartige Bewegungsformen, die scheinbar den Eindruck des Willkürlichen machen, zu Stande. Hierbei ist auch beachtenswerth, dass die oft nach Tausenden zählenden Wimpern ein und desselben Individuums streng coordinirte Bewegungen ausführen. „Sie schlagen nicht nur stets in derselben Frequenz der Schwingungen (Rhythmus) bei gleicher Amplitude, sondern sie schlagen auch sämmtlich nach derselben Richtung und immer in derselben Reihenfolge.“ (Verworn.) Die Coordination der Bewegung geht sogar so weit, dass zwei Individuen, die aus Theilung eines Mutterthiers entstehen, durchaus übereinstimmende und synchronische Bewegungen ausführen, so lange sie noch durch eine Plasmabrücke vereinigt sind. Es folgt hieraus, dass zwar die Wimperorgane das Vermögen besitzen, sich selbstthätig zusammenzuziehen, dass ihr Zusammenwirken aber durch Reizübertragungen vom Protoplasmakörper geregelt wird.
Bei der Reizübertragung scheint besonders das Ektoplasma von Bedeutung zu sein, wie aus einem Versuch von Verworn (IV. 40) hervorgeht. Derselbe machte bei Spirostomum ambiguum (Fig. 49) und Stentor coeruleus einen kleinen Einschnitt mit einer Lanzette in das die Wimperreihen tragende Ektoplasma. „In diesem Fall konnte deutlich beobachtet werden, dass die Wimperwellen nicht über die Schnittstelle hinwegliefen, sondern sich auf die eine Seite beschränkten und auf der andern Seite nicht wieder zum Vorschein kamen.“ Bisweilen beobachtete er auch, dass die Mittellage, um welche die Wimpern schlagen, in der einen Hälfte der Wimperreihen vorübergehend eine andere war, als auf der anderen Seite der Schnittstelle.
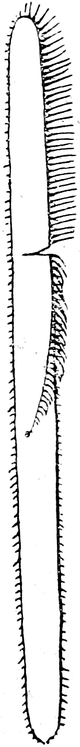
Fig. 49.
Spirostomum ambiguum. Durch einen Einschnitt ist die Continuität der die Peristomwimpern tragenden Hautstrecke unterbrochen.
Aus V
ERWORN
(
IV. 40
) Fig. 25.
III. Die contractilen Vacuolen oder Behälter einzelliger Organismen.
Contractile Vacuolen treten sehr häufig bei Amöben, Rhizopoden, Flagellaten (Fig. 7, 43, 44) und Infusorien (Fig. 50 cv) auf. Bei letzteren, bei denen sie am genauesten untersucht worden sind, ist meist im ganzen Körper nur eine einzige Vacuole, zuweilen sind zwei (Fig. 50), selten einige mehr vorhanden; sie liegen stets dicht unter der Körperoberfläche unter dem Ektoplasma. Von anderen Flüssigkeitsvacuolen, die im Körper in grosser Zahl verbreitet sein können, unterscheiden sie sich leicht dadurch, dass ihr Inhalt in regelmässigen Intervallen vollständig nach aussen entleert und wieder ergänzt wird. Sie verschwinden daher vorübergehend (Fig. 50 cv), um bald wieder zum Vorschein zu kommen (cv.′). Die Entleerung geschieht durch einen oder mehrere besondere Poren, die an der Oberfläche des Infusorienkörpers unmittelbar über der Vacuole nachweisbar sind. „Jeder Porus erscheint gewöhnlich als ein sehr kleines, von einem dunklen Randsaum umzogenes und im Inneren lichtes Kreischen. Die Helligkeit des Innern rührt von der Durchbrechung der Pellicula und Alveolarschicht her. Zuweilen setzt sich jeder Porus bis zur contractilen Vacuole in ein feines Ausflussröhrchen fort. Nicht selten sind sogar auch besondere Zufuhrkanäle (1, 2 und mehr) in ihrer Umgebung in regelmässiger Anordnung zu erkennen. Bei Paramaecium Aurelia und P. caudatum (Fig. 50), deren zuführendes Kanalsystem schon seit längerer Zeit bekannt ist und am häufigsten studirt wurde, strahlen von jeder der beiden dorsalen Vacuolen ca. 8–10 ziemlich gerade Kanäle aus, die fast über den gesammten Körper zu verfolgen sind. Jedoch greifen die Kanäle beider Vacuolensysteme nicht zwischen einander hinein.“ Sie sind in der Nähe der contractilen Vacuole am stärksten und verfeinern sich distal mehr und mehr.
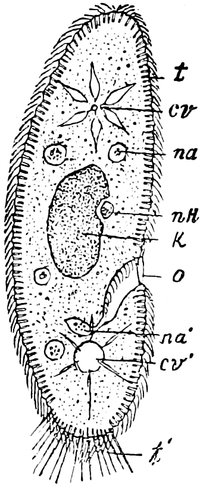
Fig. 50. Paramaecium caudatum
(halbschematisch). R. H
ERTWIG
, Zoologie Fig. 139.
k
Kern,
nk
Nebenkern,
o
Mundöffnung (Cytostom),
na′
Nahrungsvacuole in Bildung begriffen,
na
Nahrungsvacuole,
cv
contractile Vacuole im contrahirten,
cv′
im ausgedehnten Zustand,
t
Trichocysten, bei
t′
hervorgeschleudert.
Sehen wir uns nun die Wirkungsweise dieser eigenthümlichen Apparate näher an, wozu sich Paramaecium als sehr geeignetes Object darbietet (Fig. 50). Wenn die beiden contractilen Vacuolen ihre grösste Ausdehnung erreicht haben, wird plötzlich in kurzer Zeit und mit beträchtlicher Energie ihr ganzer Inhalt durch ihre Ausfuhrkanäle und Poren nach aussen entleert, sodass die Vacuolenhöhle vorübergehend ganz verschwindet. Wie bei der Zusammenziehung des Herzens, bezeichnet man diesen Zustand als Systole, dagegen die Periode, in welcher sich die Vacuole wieder mit Flüssigkeit füllt, ausdehnt und sichtbar wird, als Diastole.
Die Füllung geht in der Weise vor sich: Schon vor Beginn der Systole nehmen die oben beschriebenen, zuführenden Kanäle aus dem Entoplasma des Infusorienkörpers Flüssigkeit auf, die wahrscheinlich mit Kohlensäure und einigen Stoffwechselproducten beladen ist. Die Füllung geschieht wohl, wie Schwalbe (III. 21) vermuthet, in Folge „des Druckes, unter dem die durch immer neue Wasseraufnahme durch den Mund sich mehrende Flüssigkeit im Körper des Thieres steht.“ Zu dieser Zeit sind wegen der Füllung mit Wasser die zuführenden Kanäle gut sichtbar. Sie schwellen in der Umgebung des contractilen Behälters, welcher jetzt den höchsten Grad der Füllung erreicht hat, spindelförmig an und bilden dadurch um denselben einen Kreis rosettenförmig angeordneter Vacuolen, welche Bütschli als Bildungsvacuolen bezeichnet. Wegen ihrer Füllung kann bei der Systole der contractile Behälter die in ihm enthaltene Flüssigkeit nicht in die Zufuhrkanäle, sondern nur nach aussen entleeren. Wenn er dann wieder in die Diastole eintritt, ergiessen die prall gefüllten Bildungsvacuolen ihre Flüssigkeit in ihn hinein, wodurch er wieder sichtbar wird und sich allmählich zur ursprünglichen Grösse ausdehnt. In Folge dessen verschwinden am Anfang der Diastole die leer gewordenen Bildungsvacuolen vorübergehend, füllen sich aber von Neuem aus dem Körperparenchym bis zum Beginn der nächstfolgenden Systole.
„Bei gleichzeitiger Gegenwart mehrerer Vacuolen herrscht im Allgemeinen die Regel, dass sie sich alternierend entleeren, was eine möglichst gleichmässige Wasserausscheidung bewirkt. Die Frequenz ihrer Entleerung ist bei den einzelnen Infusorienarten im Allgemeinen eine sehr schwankende. Nach den Beobachtungen von Schwalbe (III. 21), lässt sich hierbei die Regel feststellen, dass die Frequenz der Contractionen um so grösser ist, je kleiner die contractilen Vacuolen sind. „So ziehen sich dieselben bei Chilodon cucullulus in 2 Minuten ungefähr 13- bis 14mal zusammen, bei Paramaecium aurelia in derselben Zeit nur 10- bis 11mal, bei Vorticella mikrostoma nur 1- bis 2mal. Noch seltener erfolgen die Contractionen bei Stentor und Spirostomum. Von den angeführten Thieren haben in der That Stentor und Spirostomum die grössten contractilen Behälter, dann kommt die Vorticella, dann Paramaecium aurelia und endlich Chilodon cucullulus, dessen Vacuolen wohl nur den halben Durchmesser von den bei Paramaecium vorkommenden haben; bei diesem beträgt der Durchmesser 0,0127 mm, bei der Vorticella 0,0236 mm.“ (Schwalbe.)
Das Zeitintervall zwischen zwei Entleerungen ist bei derselben Temperatur ein sehr gleichmässiges, verändert sich aber sehr bei Erhöhung oder Erniedrigung derselben. (Rossbach [III. 19], Maupas). Während bei Euplotes Charon das Zeitintervall zwischen zwei Contractionen 61 Secunden beträgt, ist es bei 30 Grad Cels. auf 23 Sec. gesunken. (Rossbach.) Die Frequenz der Contractionen hat sich demnach fast verdreifacht.
Der durch die contractilen Vacuolen erzeugte Wasserwechsel ist ein erstaunlich grosser. Nach Berechnungen von Maupas entleert z. B. Paramaecium aurelia bei 27° Celsius ein ihrem Körpervolum gleiches Volum Wasser in 46 Minuten.
Aus den mitgetheilten Beobachtungen scheint hervorzugehen, dass die contractilen Behälter nicht einfache, unbeständige Flüssigkeitstropfen im Plasma, sondern feststehende, morphologische Differenzierungen im Körper der Protozoen sind, wirkliche Zellorgane, die wahrscheinlich im Dienste der Athmung und Excretion eine wichtige Function zu erfüllen haben. Die Energie, mit welcher der Behälter seinen Inhalt bis zum vollständigen Schwund entleert, spricht dafür, dass die aus hyaliner Substanz gebildete Wandschicht wie die Substanz der Geisseln in besonderem Maasse contractil ist und sich durch diese Eigenschaft vom Entoplasma des Infusorienkörpers unterscheidet. Allerdings ist an dem contractilen Behälter mikroskopisch keine eigene Wandschicht von der übrigen Körpermasse scharf abzugrenzen, wie ja auch an der glatten Muskelfaser contractile Substanz und Protoplasma sich nicht immer sehr deutlich gegen einander absetzen, und wie die Geisseln auch an ihrer Basis in das Protoplasma der Zelle übergehen.
Mit Schwalbe (III. 21) und Engelmann bin ich also der Ansicht, dass die Behälter eine contractile Wandschicht besitzen, welche von der übrigen Körpermasse nicht abgegrenzt ist. Im Uebrigen sind bekanntlich feine Häutchen oft mikroskopisch nicht nachweisbar, obwohl sie unzweifelhaft vorhanden sind. An vielen Pflanzenzellen ist es unmöglich, den sogenannten Primordialschlauch zu sehen, solange er der Cellulosemembran fest anliegt, während man sich durch Plasmolyse von seinem Dasein überzeugen kann.
Mit dieser Auffassung befinde ich mich mit Bütschli (III. 3) im Widerspruch. Bütschli betrachtet die contractilen Behälter als einfache Flüssigkeitstropfen im Plasma. „Jede Vacuole hört mit ihrer Austreibung als solche zu existiren auf. Ihre Nachfolgerin ist ein ganz neues Gebilde, ein neu entstandener Tropfen, welcher wiederum nur bis zur Austreibung existirt.“ Sie entsteht nach ihm durch Zusammenfluss mehrerer Bildungsvacuolen, die als kleine Tröpfchen im Plasma ausgeschieden werden, sich vergrössern und dann durch Einreissen der Zwischenwände verschmelzen. Die auch von Bütschli beschriebene Existenz von zu- und abführenden Kanälen, die Constanz in der Zahl der Behälter, der Umstand, dass sich bei der Diastole der Behälter an der gleichen Stelle wieder findet, wo er bei der Systole verschwunden ist, die Verhältnisse der Frequenz bei gleichbleibender Temperatur und bei Temperaturschwankungen scheinen mir gegen die Bütschli’sche Auffassung zu sprechen. Dass am Schluss der Systole der Behälter nach Austreibung seines Inhaltes momentan nicht sichtbar ist, kann wohl nicht schwer gegen die Annahme seiner Constanz in die Wagschaale fallen, wenn man berücksichtigt, dass selbst grosse Lymphspalten und capillare Blutgefässe bei den Wirbelthieren sich im uninjicirten Zustand der Wahrnehmung entziehen.
IV. Veränderung des Zellkörpers durch passive Bewegung.
Um das Bild der Protoplasmabewegungen nach allen Seiten zu vervollständigen, ist endlich noch der Form Veränderungen zu gedenken, welche der Zellkörper gewissermaassen durch passive Bewegungen erfahren kann. Die Zelle befindet sich hier in derselben Lage wie ein Muskel, der durch eine von aussen auf ihn einwirkende Kraft, die an den Gliedmaassen ansetzt, gedehnt und wieder verkürzt wird.
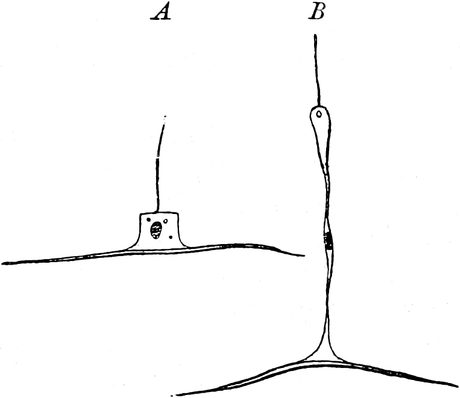
Fig. 51. Epithelmuskelzellen aus der entodermalen Auskleidung der Tentakeln einer Actinie (Sagartia parasitica).
Nach O. und R. H
ERTWIG
Taf. VI. Fig. 11. Aus H
ATSCHEK
Fig. 108.
A
Im ausgedehnten Zustand.
B
Im stark verkürzten Zustand der Tentakeln.
So verändern die Zellen des thierischen Körpers zuweilen in ausserordentlich hohem Grade ihre Form, indem sie sich allen Gestaltveränderungen anpassen müssen, welche einzelne Organe in Folge von Muskelwirkung oder durch Dehnung bei Ansammlung von Flüssigkeit und Nahrung erfahren. Fadenförmige Epithelzellen müssen sich in Cylinder, diese in Platten umwandeln, wenn bei Dehnung eines Organs sich die Oberfläche vergrössert, und die umgekehrte Metamorphose müssen sie wieder durchmachen, wenn sich dass ganze Organ und mithin auch seine Oberfläche verkleinert.
Was für gewaltige und urplötzliche Formveränderungen der Protoplasmakörper einer Zelle ohne Vernichtung seiner feinen Structur in Folge passiver Bewegungen erträgt, zeigen uns am schönsten die Coelenteraten, bei welchen sich ausgestreckte Körpertheile wie Fangfäden auf ein Zehntel oder mehr durch plötzliche, energische Muskelzusammenziehung verkürzen können. (III. 12a) Die Form, welche eine Epithelzelle darbietet, je nachdem sie einem massig oder einem stark contrahirten Körpertheil entnommen ist, fällt wesentlich verschieden aus, wie die Figuren 51 A und B lehren. Die erstere entstammt dem Tentakel einer nur massig contrahirten Actinie, die durch chemische Stoffe unempfindlich gemacht und dann abgetödtet worden war, die letztere einem bei der Abtödtung stärker contrahirten Tentakel eines anderen Individuums.
Literatur. III.
1) De Bary. Die Mycetozoen. Zeitschrift f. wissenschaftl. Zoologie. Bd. 10. 1860.
4) Alex. Ecker. Zur Lehre vom Bau u. Leben der contractilen Substanz der niedersten Thiere. Zeitschrift f. wissenschaftl. Zoologie. Bd. I. 1849.
8) Derselbe. Ueber die Flimmerbewegung. Jenaische Zeitschrift f. Medicin und Naturwissensch. Bd. IV. 1868.
9) Frommann. Beobachtungen über Structur u. Bewegungserscheinungen des Protoplasmas der Pflanzenzelle. Jena 1880.
10) Derselbe. Ueber neuere Erklärungsversuche d. Protoplasmaströmungen u. über Schaumstructuren Bütschli’s. Anatomischer Anzeiger. 1890.
13) Jürgensen. Ueber die in den Zellen der Vallisneria spiralis stattfindenden Bewegungserscheinungen. Studien des physiol. Instituts zu Breslau. 1861. Heft 1.
15) Kollmann. Ueber thierisches Protoplasma. Biolog. Centralblatt. Bd. II.
Derselbe. Rechts und links. Ortsbewegungen der Pflanzenzellen und ihrer Theile. Ebendas.
18) Purkinje u. Valentin. De phaenomeno generali et fundamentali motus vibratorii continui. 1835.
20) Sachs. Experimentalphysiologie der Pflanzen. Leipzig 1865.
22) Velten. Einwirkung strömender Elektricität auf die Bewegung des Protoplasmas etc. Sitzungsber. d. Wiener Akademie. 1876. Bd. 73.
23) Verworn. Studien zur Physiologie der Flimmerbewegung. Pflügers Archiv. Bd. 48. 1890.