SECHSTES CAPITEL. Die Lebenseigenschaften der Zelle. IV. Die Fortpflanzung der Zelle auf dem Wege der Theilung.
Reading edition
Eine der wichtigsten Eigenschaften der Zelle, insofern auf ihr die Erhaltung des Lebens überhaupt beruht, ist ihre Fähigkeit, neue Gebilde ihres Gleichen zu erzeugen und so zur Vervielfältigung des Lebens den Grund zu legen. Wie durch zahllose Beobachtungen immer sicherer gezeigt worden ist, entstehen neue Elementarorganismen nur in der Weise, dass Mutterzellen auf dem Wege der Selbsttheilung in zwei oder mehr Tochterzellen zerlegt werden. (Omnis cellula e cellula.) Dieser für die Erkenntniss des Lebens grundlegende Satz ist nach mühsamer Arbeit auf mannigfachen Umwegen und nach vielfachen Irrungen erreicht worden.
I. Geschichte der Zellenentstehung.
Schon Schleiden und Schwann (I. 28, 31) legten sich bei Ausarbeitung ihrer Theorieen die sich naturgemäss aufdrängende Frage vor: In welcher Weise entstehen die Zellen? Ihre Antwort, die sie auf Grund sehr lückenhafter und ungenauer Beobachtungen gaben, war eine verfehlte; sie liessen die Zellen, die sie mit Vorliebe Krystallen verglichen, sich wie Krystalle in einer Mutterlauge bilden. Die Flüssigkeit im Innern einer Pflanzenzelle bezeichnete Schleiden als Cytoblastem, als Keimstoff, als eine Art Mutterlauge. In dieser sollten junge Zellen dadurch entstehen, dass sich zuerst ein festes Körnchen bildet, der Nucleolus des Kerns, dass darauf um dasselbe sich eine Substanzschicht niederschlägt und indem Flüssigkeit zwischen beide dringt, zur Kernmembran wird. Der Kern ist wieder der Organisationsmittelpunkt für die Zelle, daher er auch Cytoblast genannt wird. Es wiederholt sich derselbe Process, wie bei der Bildung des Kerns um den Nucleolus. Der Cytoblast umgiebt sich mit einer durch Niederschlag aus dem Zellsaft entstandenen Membran, welche ihm anfangs dicht aufliegt, dann aber sich von ihm entfernt, indem wieder Flüssigkeit zwischen beide eindringt.
Schwann (I. 31) adoptirte die Schleiden’sche Theorie, verfiel aber dabei in einen zweiten, noch grösseren Irrthum. Er liess nämlich die jungen Zellen sich nicht allein im Innern von Mutterzellen entwickeln, wie es Schleiden that, sondern auch ausserhalb derselben in einem organischen Stoff, welcher bei den Thieren als Intercellularsubstanz zwischen vielen Zellen vorgefunden wird und welchen er ebenfalls als Cytoblastem bezeichnete. Schwann lehrte also freie Zellbildung sowohl innerhalb als ausserhalb von Mutterzellen, eine wahre Urzeugung von Zellen aus formlosem Keimstoff.
Das waren schwere, fundamentale Irrthümer, von denen sich am raschesten die Botaniker losgesagt haben. Durch Mohl (VI. 47), Unger und besonders durch die vorzüglichen Untersuchungen Nägeli’s (VI. 48) konnte schon im Jahre 1846 ein allgemeines Gesetz formulirt werden. Nach diesem Gesetz bilden sich neue Pflanzenzellen stets nur aus bereits vorhandenen, und zwar in der Weise, dass Mutterzellen durch einen Theilungsakt, wie ihn Mohl zuerst beobachtet hat, in zwei oder mehrere Tochterzellen zerfallen.
Viel hartnäckiger hat sich die Lehre von der Urzeugung von Zellen aus einem Cytoblastem in der thierischen Gewebelehre, namentlich auf dem Gebiete der pathologischen Anatomie, erhalten, wo die Geschwulst- und Eiterbildung auf sie zurückgeführt wurde. Erst nach manchen Irrwegen und durch die Bemühungen von vielen Forschern, insbesondere von Kölliker (VI. 44. 45), Reichert (VI. 58. 59) und Remak (VI. 60. 61), wurde auch hier mehr Klarheit in die Frage der Zellengenese gebracht und zuletzt noch der Cytoblastemlehre das Schlagwort „Omnis cellula e cellula“ durch Virchow (I. 33) entgegengestellt. Wie bei den Pflanzen existirt auch bei den Thieren keine Urzeugung von Zellen. Die vielen Milliarden von Zellen, aus denen z. B. der erwachsene Körper eines Wirbelthieres besteht, sind insgesammt hervorgegangen aus der unendlich oft wiederholten Theilung einer Zelle, des Eies, mit welchem das Leben eines jeden Thieres beginnt.
Ueber die Rolle, welche der Kern bei der Zelltheilung spielt, gelang es den älteren Histologen nicht, zur Klarheit zu gelangen. Mehrere Jahrzehnte lang standen sich zwei Ansichten gegenüber, von denen bald die eine, bald die andere zeitweilig zu einer grösseren Allgemeingeltung gelangt ist. Nach der einen Ansicht (die meisten Botaniker, Reichert (VI. 58), Auerbach (VI. 2a) etc.) soll der Kern vor jeder Theilung verschwinden und sich auflösen, um in jeder Tochterzelle wieder von Neuem gebildet zu werden; nach der andern Ansicht dagegen (C. E. v. Baer, Joh. Müller, Remak VI. 60, Leydig, Gegenbaur, Haeckel VI. 4b, van Beneden etc.) soll der Kern in den Theilungsprocess activ eingreifen, noch vor Beginn desselben soll er sich strecken und der spätern Theilungsebene entsprechend einschnüren und in zwei Hälften zerfallen, welche nach entgegengesetzter Richtung etwas auseinanderweichen. Dann soll sich auch der Zellkörper selbst einschnüren und in zwei Stücke trennen, für welche die beiden Tochterkerne Attractionscentren darstellen.
Jede dieser diametral entgegengesetzten Ansichten enthielt ein kleines Stück Wahrheit, keine entsprach dem wirklichen Vorgang, der den älteren Histologen zum Theil wegen der von ihnen angewandten Untersuchungsmethoden verborgen blieb. Erst in den letzten zwei Jahrzehnten ist die Erkenntniss des Zellenlebens durch die Erforschung der hochinteressanten Kernstructuren und Kernmetamorphosen bei der Zelltheilung durch Schneider VI. 66, Fol. VI. 18. 19, Auerbach VI. 2a, Bütschli VI. 81, Strasburger VI. 71–VI. 73, O. u. R. Hertwig VI. 30–38, Flemming VI. 13–17, van Beneden VI. 4a, 4b, Rabl VI. 53, Boveri VI. 6, 7 in eingreifender Weise gefördert worden. Ihre Untersuchungen, auf die ich in diesem Abschnitt noch öfters zurückkommen werde, haben zu dem allgemeinen Resultat geführt, dass der Kern ein permanentes Organ der Zelle ist, welchem eine sehr wichtige und namentlich bei der Theilung sich äussernde Aufgabe im Zellenleben zugefallen ist. Wie eine Zelle nicht durch Urzeugung entsteht, sondern direct auf dem Wege der Theilung von einer andern Zelle hervorgeht, so bildet sich auch der Kern niemals neu, sondern stammt immer von Substanztheilen eines andern Kernes ab. Das Schlagwort „Omnis cellula e cellula“ findet eine Ergänzung durch den Zusatz „Omnis nucleus e nucleo“. (Flemming VI. 12.)
Nach dieser historischen Einleitung wollen wir zuerst die Veränderungen, von denen der Kern bei der Theilung betroffen wird, alsdann die verschiedenen Arten der Zellvermehrung näher in das Auge fassen.
II. Der Process der Kerntheilung und die verschiedenen Arten desselben.
Bei jeder Vermehrung der Zellen spielen ihre Kerne eine Hauptrolle und fesseln in erster Linie das Interesse des Beobachters. Je nach den Veränderungen, die sie hierbei erleiden, unterscheidet man drei Arten der Kernvermehrung, die indirecte oder Kernsegmentirung, die directe (Flemming) oder Kernzerschnürung und die endogene Kernbildung.
1) Die Kernsegmentirung.
Mitose (Flemming). Karyokinese (Schleicher).
Dieselbe verläuft unter sehr complicirten und gesetzmässigen Erscheinungen, welche bei Thieren und Pflanzen und sogar bei vielen Protozoen in ganz auffallender Weise unter einander übereinstimmen.
Das Wesentliche des Processes besteht darin, dass die im ruhenden Kern vorhandenen, verschiedenen chemischen Substanzen (siehe Seite 34) sich schärfer voneinander trennen, typische Umlagerungen eingehen und unter Auflösung der Kernmembran mit dem Protoplasmakörper in eine nähere Wechselbeziehung treten. Besonders fällt hierbei die gesetzmässige Anordnung des Nucleïns in die Augen; auch ist dieselbe in ihren Einzelheiten bisher am genauesten und sichersten verfolgt worden, während betreffs des Schicksals der übrigen Kernsubstanzen noch Manches in Dunkel gehüllt ist.
Die ganze Nucleïnmenge des Kerns wandelt sich bei der Theilung in eine für jede Thierart constante Anzahl von feinen Fadenabschnitten um, welche untereinander nahezu gleich lang, meist gekrümmt und nach den einzelnen Thier- und Pflanzenarten von abweichender Form und Grösse sind; bald sehen sie wie Schleifen, wie Haken, wie Stäbchen oder, wenn sie sehr klein sind, wie Körner aus. Waldeyer (VI. 76) hat für die Fadenabschnitte aus Nucleïn die allgemein zutreffende Bezeichnung Chromosomen vorgeschlagen. Ich werde gewöhnlich für dieselben das bequemere und ebenso für alle einzelnen Fälle passende Wort „Kernsegmente“ gebrauchen. Das Wort drückt zugleich das Wesentliche der indirecten Theilung aus, welches doch hauptsächlich darin besteht, dass das Nucleïn in Segmente zerlegt wird. Desswegen scheint mir auch das Wort „Kernsegmentirung“ dem längeren und weniger bezeichnenden Ausdruck „indirecte Kerntheilung“ oder den für Nichtfachmänner unverständlichen Fremdwörtern „Mitose und Karyokinese“ vorzuziehen zu sein.
Im Verlaufe der Theilung zerfallen die Kernsegmente durch eine Längsspaltung in je zwei, eine Zeit lang parallel verlaufende und noch eng verbundene Tochtersegmente. Dieselben weichen dann in zwei Gruppen auseinander und werden in gleicher Zahl auf die Tochterzellen vertheilt, wo sie die Grundlage für die bläschenförmigen Kerne derselben bilden.
Für den Process der Kernsegmentirung ist ferner charakteristisch 1) das Auftreten zweier Pole, welche allen Zellbestandtheilen als Mittelpunkte für ihre Anordnung dienen; 2) die Ausbildung der sogenannten Kernspindel; 3) die strahlige Anordnung des Protoplasmas um die beiden Pole.
Was die beiden Theilungspole anbetrifft, so erscheinen dieselben schon früh am bläschenförmigen Kern zu einer Zeit, wo seine Membran noch nicht aufgelöst ist und zwar in dem an die letztere unmittelbar angrenzenden Protoplasma. Sie liegen zu dieser Zeit dicht bei einander und bestehen aus zwei ausserordentlich kleinen Kügelchen einer schwer färbbaren Substanz, die vielleicht von Substanztheilen des Nucleolus abstammt. Die Kügelchen sind die schon früher beschriebenen Pol- oder Centralkörperchen (corpuscules polaires, Centrosomen). Später rücken sie allmählich, indem sie um die Kernoberfläche einen Halbkreis beschreiben, weiter auseinander, bis sie die entgegengesetzten Enden des Kerndurchmessers einnehmen.
Zwischen den Polkörperchen bildet sich die Kernspindel aus. Sie besteht aus zahlreichen, sehr feinen, parallel angeordneten Spindelfäserchen, die wahrscheinlich vom Liningerüst des ruhenden Kerns abstammen. In ihrer Mitte liegen sie etwas weiter auseinander, während sie mit ihren Enden nach den Polen zu convergiren, wodurch das Bündel der Fäserchen mehr oder minder die Form einer Spindel erhält. Die Spindel wird erst klein angelegt, wenn die Polkörperchen auseinander zu weichen beginnen, und ist dann schwer als ein dieselbe verbindender Substanzstreifen sichtbar zu machen. Mit zunehmender Entfernung der Pole wächst sie gleichfalls an Grösse heran und hebt sich dabei schärfer von ihrer Umgebung ab.
Um die Pole der Kernfigur beginnt sich auch der Protoplasmakörper der Zelle in einer Weise anzuordnen, als ob von ersteren gleichsam eine polare Wirkung ausgeübt würde. Es entsteht eine Figur wie um die Enden eines Magneten, die in Eisenfeilspähne eingetaucht sind. Das Protoplasma bildet zahlreiche, feine Fäden, welche sich in radiärer Richtung um die Polkörperchen als Mittelpunkte oder Attractionscentren herum gruppiren. Erst sind sie kurz und auf die allernächste Umgebung der Attractionscentren beschränkt. Während des Verlaufs des Theilungsprocesses aber werden sie immer länger, bis sie sich endlich durch den ganzen Zellkörper erstrecken. Die Protoplasmafigur um die Pole wird in der Literatur als Plasmastrahlung, Strahlenfigur, Stern, Sonne, wobei die Fäden den von einem Himmelskörper ausgehenden Lichtstrahlen verglichen werden, Attractionssphäre etc. beschrieben.
Das sind kurz die verschiedenartigen Elemente, aus denen sich die Kerntheilungsfiguren zusammensetzen. Polkörperchen, Spindel und die beiden Plasmastrahlungen werden von Flemming als der achromatische Theil der Kerntheilungsfigur zusammengefasst und den verschiedenen Bildern, die durch Umordnung des Nucleïns entstehen und den chromatischen Theil der Figur bilden, gegenüber gestellt.
Alle einzelnen Bestandtheile der gesammten Theilungsfigur ändern sich durch Umgruppirung ihrer Elemente im Verlauf des ganzen Processes in gesetzmässiger Weise. Um sich besser zu orientiren, empfiehlt es sich, vier verschiedene Phasen zu unterscheiden, die sich überall in regelmässiger Folge ablösen.
Die erste Phase besteht in der Vorbereitung des ruhenden Kerns zur Theilung und führt zur Bildung der Kernsegmente, der Kernpole und der ersten Anlage der Spindel. In der zweiten Phase gruppiren sich die Kernsegmente nach Auflösung der Kernmembran zu einer regelmässigen Figur in der Mitte zwischen beiden Polen im Aequator der Spindel. In der dritten Phase vertheilen sich die Tochtersegmente, welche aus Längsspaltung der Muttersegmente schon in einer der vorausgegangenen Phasen entstanden sind, auf zwei Gruppen, die sich vom Aequator in entgegengesetzten Richtungen entfernen und bis in die Nähe der Kernpole auseinander weichen. Die vierte Phase führt zur Reconstruction bläschenförmiger, ruhender Tochterkerne aus den zwei Gruppen der Tochtersegmente und zur Theilung des Zellkörpers in zwei Tochterzellen.
Nach dieser allgemeinen Orientirung soll der Verlauf der Zelltheilung an einzelnen Beispielen in seinen Einzelheiten genauer beschrieben werden, dann soll zum Schluss in einem besonderen Abschnitt noch auf einzelne strittige Punkte näher eingegangen werden.
Im Thierreich sind die zum Studium geeignetesten und am häufigsten untersuchten Objecte die Gewebszellen junger Larven von Salamandra maculata und von Triton, die Samenzellen geschlechtsreifer Thiere, ferner die Furchungskugeln kleiner, durchsichtiger Eier, namentlich von Nematoden (Ascaris megalocephala) und von Echinodermen (Toxopneustes lividus). Im Pflanzenreich empfiehlt sich zur Untersuchung der protoplasmatische Wandbeleg aus dem Embryosack, namentlich von Fritillaria imperialis, die Entwicklung der Pollenzellen von Liliaceen etc.
a) Zelltheilung bei Salamandra maculata unter Zugrundelegung der Theilung der Samenmutterzellen. (Flemming VI. 13.)
Erste Phase. Vorbereitung des Kerns zur Theilung.
Bei Salamandra maculata gehen Veränderungen am ruhenden Kern schon geraume Zeit vor Beginn der Theilung vor sich. Die überall auf dem Liningerüst vertheilten Nucleïnkörnchen (Fig. 75 A) rücken an einzelnen Stellen dichter aneinander und ordnen sich zu gewundenen feinen Fäden an, die mit kleinen Zäckchen und Höckern bedeckt sind. Von diesen entspringen unter rechtem Winkel zahlreiche feinste Fäserchen, die nun sichtbar werdenden Strecken des Liningerüstes, von deren Oberfläche sich das Nucleïn zurückgezogen hat. Später werden die Nucleïnfäden noch deutlicher ausgeprägt und nehmen, indem die Zäckchen und Höcker schwinden, eine vollkommen glatte Oberfläche (Fig. 75 B) an. Da sie nach allen Richtungen den Kernraum in Windungen durchsetzen, erzeugen sie eine Figur, welche Flemming die Knäuelform (Spirem) bezeichnet hat. Viel dichter als in den Samenzellen ist der Knäuel in den Epithelzellen von Salamandra, in denen der Faden zugleich auch viel feiner und länger ist (Fig. 76).
Darüber, ob Anfangs der Knäuel aus einem einzigen, langen Faden oder gleich aus einer grösseren Anzahl von solchen besteht, lauten die Angaben verschieden. Letzteres scheint mir mit Rabl (VI. 53) das Wahrscheinlichere zu sein.
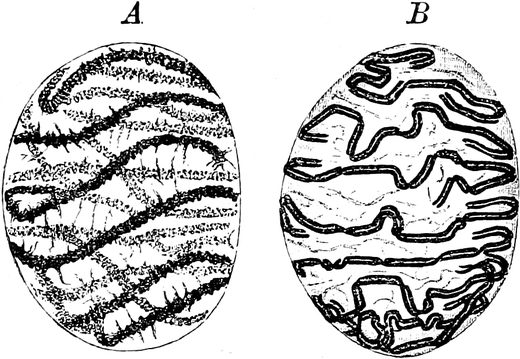
Fig. 75.
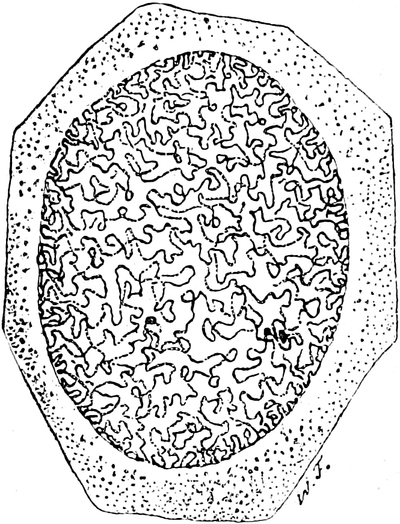
Fig. 76.
Fig. 75. A Ruhender Kern einer Samenmutterzelle von Salamandra maculata. Nach FLEMMING Taf. 23, Fig. 1. Aus HATSCHEK.
B Kern einer Samenmutterzelle von Salamandra maculata. Knäuelstadium. Der Kernfaden zeigt schon eine Längsspaltung. Schema nach FLEMMING Taf. 26, Fig. 1. Aus HATSCHEK.
Fig. 76. Epithelkern im Anfang der Theilung von der Mundbodenplatte des Kiemengerüstes einer Salamanderlarve. Enge Knäuelform. Zwei Nucleolenreste noch erhalten. Nach FLEMMING.
In der Färbbarkeit tritt gegen früher ein auffallender Unterschied ein. Je deutlicher und schärfer die Fäden ausgeprägt werden, um so stärker färben sie sich und um so energischer halten sie auch den Farbstoff fest, wie dies beim Gerüst des ruhenden Kernes nicht der Fall ist. Besonders bei Anwendung der Graham’schen Färbungsmethode lässt es sich erreichen, dass die ruhenden Kerne allen Farbstoff abgeben, während die in Vorbereitung zur Theilung begriffenen und die sich theilenden Kerne allein durch ihre starke Färbung die Aufmerksamkeit des Beobachters auf sich ziehen.
In den Anfangsstadien der Knäuelbildung sind die Nucleolen noch vorhanden, verkleinern sich aber allmählich und sind bald spurlos verschwunden, ohne dass es bis jetzt gelungen ist, ganz sicher zu erforschen, was aus ihrer Substanz geworden ist.
Während der Ausbildung des Knäuels kann man bei sorgsamer Beobachtung an der Oberfläche des Kerns eine kleine Stelle erkennen, welche während des weiteren Processes sich immer deutlicher markirt und von Rabl als Polfeld bezeichnet wird (Fig. 77). Die ihr vis-à-vis gelegene Oberfläche des Kerns ist die Gegenpolseite. Nach ihnen beginnen sich die Nucleïnfäden immer deutlicher zu orientiren. Von der Gegenpolseite kommend, ziehen sie bis in die Nähe des Polfeldes, „biegen hier schleifenförmig um und kehren dann wieder in vielen kleinen, unregelmässigen, zackigen Windungen in die Nähe ihres Ausgangspunktes zurück“. Im weiteren Verlauf werden die Fäden kürzer und entsprechend dicker, sie sind weniger gewunden, und rücken etwas weiter auseinander, so dass jetzt der ganze Fadenknäuel viel lockerer geworden ist. Ihre Schleifenform tritt immer deutlicher hervor. Die Gesammtzahl der Schleifen oder Kernsegmente lässt sich in günstigen Fällen auf 24 bestimmen, eine Zahl, welche für die Gewebszellen und die Ursamenzellen von Salamandra und Triton gesetzmässig ist.
Gleichzeitig haben sich im Polfeld wichtige Gebilde der Kernfigur, die beiden Polkörperchen und die Spindel, angelegt. Dieselben sind auf diesem Stadium wegen ihrer geringen Färbbarkeit, ihrer Kleinheit und Zartheit schwer sichtbar zu machen, da sie schon durch Körnchen, die sich im Protoplasma in ihrer Umgebung ansammeln, mehr oder minder verdeckt werden können. Nach Flemming und Hermann lassen sich an gelungenen Präparaten zwei dicht bei einander gelegene Polkörperchen beobachten, welche wahrscheinlich durch Theilung eines ursprünglich einfachen Kügelchens ihren Ursprung genommen haben. Zwischen ihnen tritt in Form verbindender Fäden die erste Anlage der späteren Spindel auf.
Zweite Phase der Theilung.
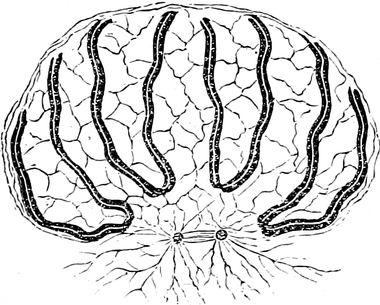
Fig. 77.
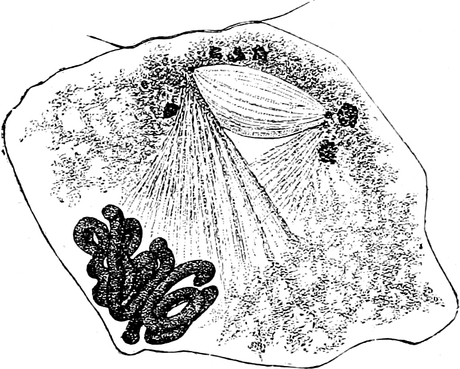
Fig. 78.
Fig. 77. Schematische Darstellung eines Kerns mit dem Polfeld, in welchem zwei Polkörperchen und die Spindel entstehen. Nach FLEMMING Taf. 39, Fig. 37.
Fig. 78. Kern einer Samenmutterzelle von Salamandra maculata in Vorbereitung zur Theilung. Anlage der Spindel zwischen den beiden Polkörperchen. Nach HERMANN (VI. 29) Taf. 31, Fig. 7.
Der Beginn der zweiten Phase lässt sich am besten wohl von der Zeit an rechnen, wo die Kernmembran undeutlich wird und sich auflöst. Indem der Kernsaft sich gleichmässig im Zellkörper vertheilt, kommen die Kernsegmente jetzt mitten in das Protoplasma zu liegen (Fig. 78). In ihrer Nähe befinden sich die beiden Polkörperchen, die jetzt weiter auseinander rücken. In demselben Maasse nimmt zwischen ihnen die Spindelanlage an Ausdehnung und Deutlichkeit zu und zeigt sich aus zahlreichen, feinsten Fäserchen zusammengesetzt, die sich continuirlich von einem Polkörperchen zum andern erstrecken, wie die von Hermann dargestellten Präparate so schön zeigen. Jetzt beginnt auch von den Polen der Kernfigur sich ein Einfluss auf das umgebende Protoplasma geltend zu machen. Zahlreiche Protoplasmafädchen gruppiren sich in radiärer Richtung um je ein Polkörperchen als Mittelpunkt herum und zwar so, dass sie vorzugsweise nach der Gegend, wo die Kernsegmente liegen, ausstrahlen und sich an ihrer Oberfläche anzusetzen scheinen. Rasch vergrössert sich von hier an die Spindel, bis sie die ansehnlichen Dimensionen der Figur 79 erreicht hat.
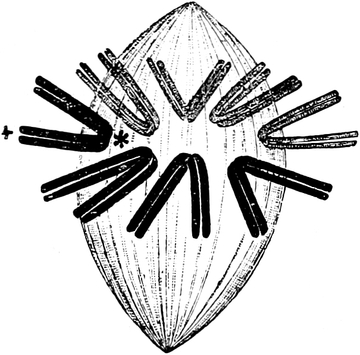
Fig. 79. Schematische Darstellung der Kernsegmentirung
nach F
LEMMING
. Stadium, auf welchem die Kernsegmente im Aequator der Spindel angeordnet sind. Aus H
ATSCHEK
.
Währenddem verändert sich auch die chromatische Figur von Grund aus (Fig. 79). Die Kernsegmente sind noch um ein Erhebliches kürzer und dicker geworden, sie legen sich um die Mitte der Spindel als ein vollständig geschlossener Ring herum und gehen jetzt die von Flemming als Mutterstern beschriebene, regelmässige Anordnung ein. An den Segmenten ist die Schleifenform auf das Deutlichste ausgeprägt. Ohne Ausnahme haben sie sich so orientirt, dass die Winkel der Schleifen gegen die Spindelaxe, ihre beiden Schenkel dagegen nach der Oberfläche der Zelle gekehrt sind. Alle 24 Schleifen liegen ziemlich genau in einer Ebene, welche senkrecht durch die Mitte der Spindel hindurchgeht, als Aequatorialebene bezeichnet werden kann und mit der später auftretenden Theilungsebene identisch ist. Von einem der beiden Pole aus betrachtet, hat die chromatische Figur „die Form eines Sterns, dessen Strahlen von den Schenkeln der Schleifen gebildet werden und dessen Mitte das Bündel achromatischer Fäden, das die Kernspindel aufbaut, durchsetzt“. Bei dieser Ansicht lassen sich die Kernsegmente am besten überblicken und ihre Zahl sich auf 24 bestimmen.
In die zweite Phase fällt noch ein sehr wichtiger Vorgang. Wenn man an gut conservirten Präparaten und bei starker Vergrösserung die Kernsegmente (Fig. 79) genauer untersucht, so wird man wahrnehmen, dass ihrer Länge nach ein feiner Spalt durch sie hindurchgeht und dass in Folge dessen jetzt jeder Mutterfaden in zwei genau parallel verlaufende und dicht zusammenliegende Tochterfäden zerlegt ist. Da früher bei der Anlage der Fäden aus dem Kerngerüst von dieser Structur nichts zu sehen war, muss sie sich erst nachträglich ausgebildet haben. Meist tritt die Längsspaltung schon in der Phase des lockern Knäuels ein (Fig. 75 B.), stets ist sie in der zweiten Phase (des Muttersterns) vollendet und am schärfsten ausgeprägt. Der ganze Vorgang, welcher zuerst von Flemming (VI. 12, 13) bei Salamandra entdeckt, an diesem und andern Objecten von v. Beneden (VI. 4a), Heuser (VI. 39), Guignard (VI. 23), Rabl (VI. 53) und vielen anderen bestätigt worden ist, scheint bei der indirecten Kerntheilung überall vorzukommen und ist für das Verständniss des Theilungsprocesses von der grössten Wichtigkeit, wie bei der theoretischen Beurtheilung desselben später gezeigt werden wird.
Dritte Phase der Theilung.
Die dritte Phase der Theilung ist dadurch ausgezeichnet, dass sich die äquatorial gelegene, einfache Gruppe der Muttersegmente in zwei Gruppen von Tochtersegmenten sondert, welche nach entgegengesetzten Richtungen auseinander weichen und in die Nähe der beiden Pole der Kernfigur zu liegen kommen (Fig. 80, A B C). Aus dem Mutterstern entstehen, wie Flemming sich ausdrückt, die beiden Tochtersterne. Der schwer zu beobachtende Vorgang vollzieht sich im Einzelnen in folgender Weise:
Die durch Längsspaltung entstandenen Tochtersegmente je eines ursprünglichen Muttersegments trennen sich an dem Winkel der Schleife, welcher der Spindel zugekehrt ist, voneinander und weichen nach den Polkörperchen zu auseinander, während sie an den Schenkelenden noch eine Zeit lang in Zusammenhang bleiben. Schliesslich erfolgt auch hier eine Trennung. Aus den 24 Mutterschleifen sind 2 Gruppen von je 24 Tochterschleifen entstanden, die bis auf einen geringen Abstand an die Polkörperchen heranrücken und dann in ihrer Bewegung Halt machen. Nie kommen sie an die Pole selbst zu liegen. Zwischen den beiden Gruppen spannen sich feine „Verbindungsfäden“ aus, deren Ursprung wohl auf die Spindelfasern zurückzuführen ist.
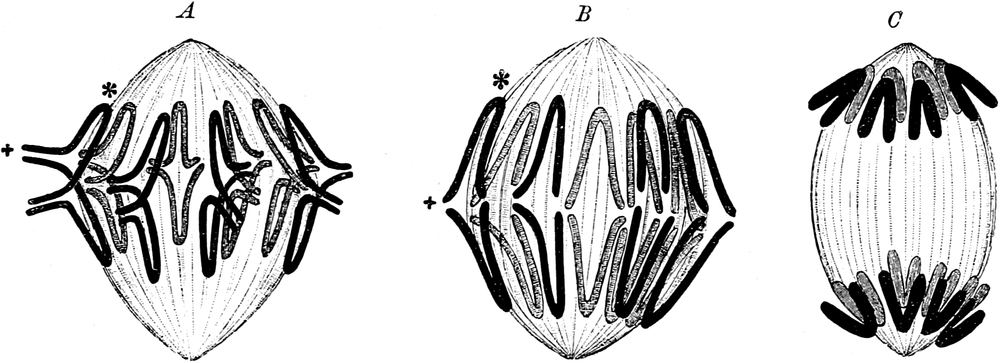
Fig. 80. Schematische Darstellung der Kernsegmentirung
nach F
LEMMING
. Die Tochtersegmente weichen nach den Polen in zwei Gruppen auseinander. Aus H
ATSCHEK
.
Die einzelnen Schleifen haben „ihre Winkel nach den Polen, ihre Schenkel theils schräg, theils senkrecht gegen die Aequatorialebene gekehrt“. Sie sind ihrer Entstehung gemäss anfangs viel dünner als die Mutterfäden, verkürzen sich aber von jetzt ab und werden dementsprechend dicker. Bei der Entstehung der Tochtersterne liegen sie ziemlich lose nebeneinander, dann rücken sie dichter zusammen, so dass sich ihre Anzahl und ihr Verlauf wieder schwieriger und nur ausnahmsweise feststellen lässt.
Vierte Phase der Theilung.
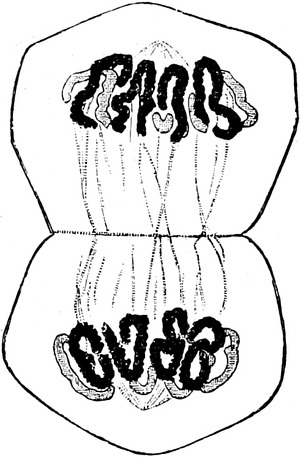
Fig. 81. Schematische Darstellung der Kernsegmentirung
nach F
LEMMING
. Aus den Tochtersegmenten beginnt sich der ruhende Kern zu bilden. Aus H
ATSCHEK
.
Während der vierten Theilungsphase wandelt sich allmählich jede Gruppe von Tochtersegmenten wieder in einen bläschenförmigen, ruhenden Kern um (Fig. 81). Die Fäden rücken noch enger zusammen, krümmen sich stärker und werden dicker, sie erhalten eine rauhe und zackige Oberfläche, indem sie kleine Fortsätze nach Aussen hervorstrecken. Um die ganze Gruppe herum bildet sich eine zarte Kernmembran aus. Die Strahlung um das Polkörperchen wird allmählich schwächer und ist bald ganz geschwunden. Auch das Polkörperchen und die Spindelfasern sind schliesslich nicht mehr nachzuweisen. Was aus ihnen wird, ist noch nicht mit genügender Sicherheit aufgeklärt. Wie ihre Entstehung ist auch ihr Schwund in Dunkel gehüllt. In der Gegend des früheren Polkörperchens zeigt der in Reconstruction begriffene Tochterkern eine Delle; Rabl erblickt in ihr das Eingangs beschriebene Polfeld des sich zur Theilung anschickenden Kerns und vermuthet, dass sich in ihr das Polkörperchen in das Protoplasma des Zellenleibes eingeschlossen erhält. Allmählich schwillt der Kern durch Aufnahme von Kernsaft mehr an, wird kuglig und erhält wieder das Gerüstwerk des ruhenden Kerns mit unregelmässig vertheilten, kleineren und grösseren Nucleïnkörnchen. Auch ein oder mehrere Nucleolen sind während der Reconstruction im Gerüstwerk wieder zum Vorschein gekommen, doch ist es noch nicht gelungen, über ihre Herkunft Sicheres zu ermitteln.
Wenn am Anfang der vierten Phase die beiden Tochtersterne am weitesten auseinander gerückt sind und zur Umwandlung in die Tochterkerne die einleitenden Schritte thun, kommt es auch zur Theilung des Zellkörpers selbst. Die Strahlungen an den Polkörperchen haben dann ihre grösste Ausdehnung erreicht. Jetzt macht sich eine kleine Furche an der Oberfläche des Zellkörpers bemerkbar, entsprechend einer Ebene, welche senkrecht durch die Mitte der Kernaxe, welche die beiden Polkörperchen verbindet, hindurchgeht und als Theilungsebene schon oben bezeichnet wurde. „Die Furche beginnt einseitig, greift nach und nach um den Aequator herum, bleibt aber auf der Seite, wo sie begann, tiefer als auf der entgegengesetzten“ (Flemming). Die ringförmige Einschnürung schneidet bald immer tiefer in den Zellkörper ein und zerlegt ihn schliesslich vollständig in zwei nahezu gleich grosse Hälften, von denen eine jede einen in Reconstruction begriffenen Tochterkern einschliesst. Mit Beendigung der Durchschnürung beginnt die Strahlung an den Polen zu erlöschen.
An vielen Objecten sind die oben erwähnten Verbindungsfasern zwischen den Tochterkernen bis zur Vollendung der Theilung nachzuweisen. Sie werden dann auch bei der Zerschnürung des Zellkörpers in ihrer Mitte durchgetrennt. Zu dieser Zeit kann zuweilen in ihrer Mitte eine geringe Anzahl sich scharf färbender Kügelchen bemerkt werden, die Flemming (VI. 13II) Zwischenkörperchen nennt und als ein muthmaassliches Aequivalent der bei Pflanzen besser ausgebildeten Zellplatte deutet.
b) Theilung der Eizellen von Ascaris megalocephala und Toxopneustes lividus.
In den Eiern von Ascaris zeichnen sich die Kerne durch die Grösse und Deutlichkeit der Polkörperchen und durch die geringe Anzahl der Kernsegmente aus, die bei einer Art vier, bei einer andern Art sogar nur zwei beträgt. Besonders deutlich ist an diesem Object ein sehr wichtiges Phänomen, die Vermehrung der Polkörperchen durch Selbsttheilung, zu beobachten. Am besten nehmen wir die Untersuchung zu der Zeit auf, wo sich das Ei zum ersten Male gefurcht hat und sich zu beiden Seiten der Theilungsebene aus den vier Kernschleifen wieder ein bläschenförmiger, unregelmässig conturirter Kern hervorbildet (Fig. 82). Derselbe besitzt mehrere lappenförmige Fortsätze an der Gegenpolseite und zeigt das Nucleïn in einem lockeren Gerüstwerk ausgebreitet. In der Gegend des früheren Poles der Theilungsfigur ist noch das Polkörperchen zu erkennen, eingehüllt in körniges Protoplasma, welches gegen die Dottermasse des Eies absticht und von v. Beneden als Attractionssphäre, von Boveri als Archoplasma beschrieben wird.
Ehe nun überhaupt der Kern zur vollen Ruhe zurückgekehrt ist, ja zuweilen sogar vor Abschluss der ersten Theilung, setzen schon wieder die Vorbereitungen zur zweiten Theilung ein; sie beginnen mit Veränderungen des Polkörperchens (Fig. 84). Dasselbe streckt sich parallel zur ersten Theilungsebene in die Länge, wird bisquitförmig und theilt sich, wie v. Beneden (VI. 4b) und Boveri (VI. 6. 1888) entdeckt haben, durch Einschnürung in zwei Tochterpolkörperchen, die eine Zeit lang noch von einer gemeinsamen, körnigen Sphäre eingeschlossen sind. Hierauf rücken die beiden Polkörperchen etwas weiter auseinander (Fig. 83), was die Trennung ihrer gemeinsamen Strahlensphäre in zwei besondere Sphären zur Folge hat.
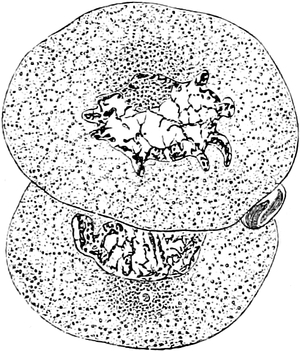
Fig. 82.
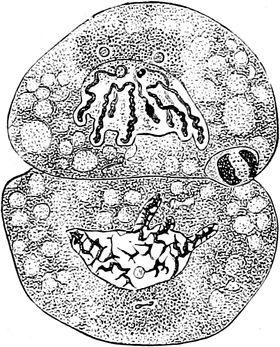
Fig. 83.
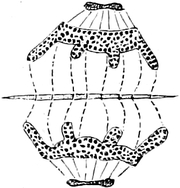
Fig. 84.
Fig. 82. Zweigetheiltes Ei von Ascaris megalocephala; die Kerne im Ruhezustand; Polkörperchen jederseits noch einfach. Nach BOVERI Taf. IV, Fig. 74.
Fig. 83. Zweigetheiltes Ei von Ascaris megalocephala. Die Kerne in Vorbereitung zur Theilung begriffen. Die Polkörperchen getheilt. Nach BOVERI Taf. IV, Fig. 75 u. 76.
Fig. 84. Zwei Tochterkerne am Anfange der Reconstruction mit lappigen Fortsätzen. Die Polkörperchen vermehren sich durch Selbsttheilung. Nach V. BENEDEN und NEYT Taf. VI, Fig. 13.
Die Theilung des Polkörperchens giebt das Signal, dass auch der Kern, noch ehe er ganz zur Ruhe zurückgekehrt ist, gleich wieder in die folgende Theilungssphase eintritt (Fig. 83). Das Nucleïn zieht sich aus dem Gerüst in vier lange Schleifen zusammen, die erst mit Zacken bedeckt sind, dann eine glatte Contur erhalten. Die vier Schleifen sind ähnlich orientirt, wie die Tochtersegmente nach der ersten Theilung, so dass Boveri (VI. 6) der schon von Rabl (VI. 53) aufgestellten Ansicht zuneigt, dass sie aus der Substanz der letzteren sich direct ableiten und auch im Zustand der Ruhe eine selbständige Individualität bewahren. Die Schleifenwinkel sind nach dem ursprünglichen Pol (dem Polfeld bei Salamandra), die kolbig angeschwollenen Schenkelenden nach der Gegenpolseite hin gewandt.
Jetzt beginnt die zweite Phase der Theilung. Die Polkörperchen rücken mit ihren Sphären weit auseinander und nehmen eine solche Stellung ein, dass die sie verbindende Axe entweder etwas schräg oder parallel zur ersten Theilungsebene zu liegen kommt. Die Kernmembran löst sich auf. Die vier Segmente ordnen sich in der früher beschriebenen Weise im Aequator zwischen beiden Polkörperchen an, in deren Umgebung jetzt eine deutliche Strahlung im Protoplasma entstanden ist; sie bieten, vom Pol aus gesehen, das in Figur 85 A dargestellte Bild dar. Es folgt die Längsspaltung der vier Segmente und der Eintritt in die dritte Phase der Theilung (Fig. 85 B). Die durch Spaltung entstandenen Tochtersegmente trennen sich und weichen nach den beiden Polen zu auseinander. E. van Beneden (VI. 4b) und Boveri (VI. 6) lassen hierbei die Spindelfasern eine active Rolle spielen (Fig. 86). Nach ihrer Meinung ist die Spindel bei Ascaris aus zwei voneinander unabhängigen Halbspindeln zusammengesetzt. Jede besteht aus zahlreichen Protoplasmafasern, die nach dem Polkörperchen zu convergiren und sich an ihm mit ihren Enden anheften, während die entgegengesetzten Enden divergiren, an die Kernschleifen herantreten und sich an verschiedenen Punkten der ihnen zugekehrten Tochtersegmente festsetzen. Durch zunehmende Verkürzung dieser Fasern in Folge von Contraction sollen nach van Beneden und Boveri die vier Tochtersegmente voneinander getrennt und nach den Polkörperchen geradezu hingezogen werden.
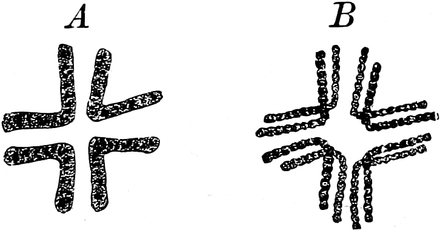
Fig. 85.
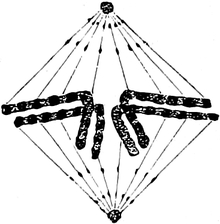
Fig. 86.
Fig. 85. A Vier Muttersegmente vom Pol der Kernfigur aus gesehen. Nach V. BENEDEN und NEYT Taf. VI, Fig. 16.
B Längsspaltung der vier Muttersegmente in acht Tochtersegmente. Nach V. BENEDEN und NEYT Taf. VI, Fig. 17.
Fig. 86. Zusammensetzung der Spindel aus zwei Halbspindeln, deren Fasern sich an die Tochtersegmente ansetzen. Nach V. BENEDEN und NEYT Taf. VI, Fig. 8.
In der vierten Phase erfolgt die Durchschnürung des Zellkörpers und die Reconstruction des Tochterkerns. Nach van Beneden geschieht dieselbe in der Weise (Fig. 87), dass die vier chromatischen Schleifen (A) aus dem Protoplasma Flüssigkeit, die Kernsaft wird, aufnehmen; sie durchtränken sich mit derselben wie ein Schwamm und schwellen daher zu dicken Schläuchen (B) auf. Das Nucleïn vertheilt sich in Körnern, die durch feine Fäden verbunden und namentlich an der Oberfläche der Schläuche gelegen sind. Diese rücken mit ihren mittleren Abschnitten dicht zusammen und verschmelzen hier untereinander. So entsteht ein bläschenförmiger, gelappter, von Kernsaft durchtränkter Kern (Fig. 87 C), der sich gegen das Protoplasma mit einer Membran abgrenzt und die chromatische Substanz wieder auf einem feinen Gerüst vertheilt zeigt.
Während die Eier von Ascaris für das Studium der Polkörperchen und der Kernsegmente besonders geeignet sind, bieten die kleinen Eier der Echinodermen (Hertwig [VI. 30a], Fol. [VI. 19a]) und einzelner wirbelloser Thiere wieder andere Vortheile für das Studium dar; so zeigen sie uns namentlich schön auch bei Untersuchung der lebenden Zelle die Strahlungserscheinungen im Protoplasma ausgebildet. Es sei daher auch hierauf noch etwas näher eingegangen.
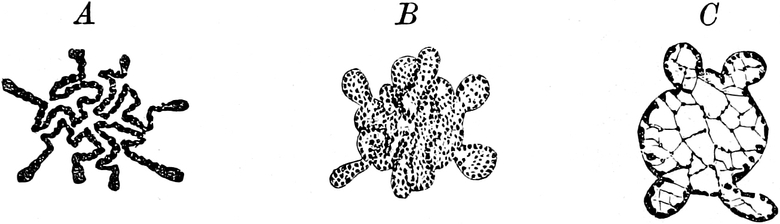
Fig. 87.
A
Eine Gruppe von vier Tochtersegmenten vom Pol aus gesehen. Die Endanschwellungen der Schleifen sind sehr ausgeprägt.
Nach
V
. B
ENEDEN
und N
EYT
Taf. VI, Fig. 19.
B
Reconstruction des Kerns auf Kosten der vier Tochtersegmente.
Schematisch nach
V
. B
ENEDEN
und N
EYT
Taf. VI, Fig. 20.
C
Ruhestadium des Kerns vom Pol aus gesehen.
Nach
V
. und N
EYT
Taf. VI, Fig. 21.
Wenige Minuten nach der Befruchtung (Fig. 88) sieht man am lebenden Echinodermen-Ei den kleinen, kugligen Furchungskern als ein helles Bläschen in der Mitte des Dotters gelegen und von Protoplasmastrahlen, wie eine Sonne von ihren Lichtstrahlen, umgeben. — Die Strahlung tritt während des Lebens an unserem Object deswegen so klar hervor, weil die zahlreichen, im Dotter eingelagerten kleinen Körnchen der strahligen Anordnung des Protoplasmakörpers passiv folgend ebenfalls in radiären Reihen angeordnet sind. Nach kurzer Zeit beginnt dieses in den Befruchtungsvorgängen seine Erklärung findende Strahlensystem zu erblassen und sich allmählich in zwei an entgegengesetzten Punkten des Kerns auftauchende Strahlensysteme umzubilden, die erst klein beginnen, dann von Minute zu Minute deutlicher ausgeprägt und grösser werden und sich schliesslich wieder über die ganze Dotterkugel ausdehnen und dieselbe in zwei um je ein Attractionscentrum herum strahlig angeordnete Massen zerlegen (Fig. 89).
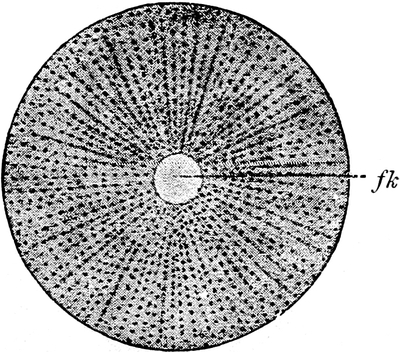
Fig. 88. Ei eines Seeigels gleich nach beendeter Befruchtung.
Aus O. H
ERTWIG
, Entwicklungsgesch. Fig. 20.
Ei und Samenkern sind zum Furchungskern (
fk
) verschmolzen, der im Centrum einer Protoplasmastrahlung liegt.
In der Mitte der beiden Strahlungen unterscheidet man bei ihrem Auftauchen einen kleinen, homogenen Fleck, der sich an die Kernoberfläche anschmiegt und frei von Körnchen ist. In ihm ist das Polkörperchen eingeschlossen, welches sich am lebenden Object der Wahrnehmung vollständig entzieht.
Je mehr die Strahlungen deutlicher werden und sich in die Nachbarschaft weiter ausdehnen, um so mehr nehmen in der Umgebung der Polkörperchen die Ansammlungen von homogenem, ganz körnerfreiem Protoplasma zu und rücken allmählich mit den Polen weiter auseinander. Da zu dieser Zeit auch der Kern seine bläschenförmige Beschaffenheit verliert und die für andere Objecte schon beschriebene Spindelstructur annimmt, die sich während des Lebens wegen ihrer Feinheit der Beobachtung ganz entzieht, entsteht im körnigen Dotter das in Figur 89 dargestellte, ausserordentlich charakteristische Bild, welches man passender Weise einer Hantel, wie sie beim Turnen gebraucht wird, vergleichen kann. Die beiden Ansammlungen homogenen Protoplasmas, in deren Mitte die Pole der Theilungsfigur eingeschlossen sind, entsprechen den Köpfen der Hantel. Der die letzteren verbindende, körnchenfreie Streifen zeigt die Stelle an, wo auf den vorausgehenden Stadien der jetzt unsichtbar gewordene Kern gelegen war, der sich zur Spindel umgewandelt hat, welche mit ihren Enden bis zu den Polkörperchen heranreicht. Um die homogene Hantelfigur herum ist die körnige Dottermasse in zwei Strahlensystemen angeordnet, welchen Fol den Namen Amphiaster oder Doppelstern gegeben hat.
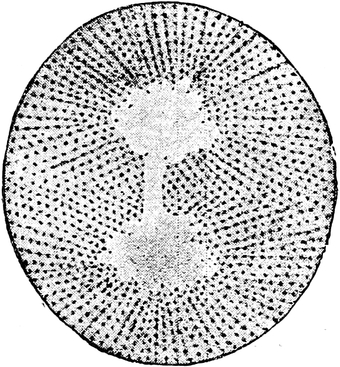
Fig. 89. Ei eines Seeigels in Vorbereitung zur Theilung. Nach dem lebenden Object gezeichnet.
Aus O. H
ERTWIG
, Entwicklungsgesch. Fig. 27.
Der Kern ist im frischen Zustand nicht mehr zu sehen, an seiner Stelle ist eine Hantelfigur entstanden.
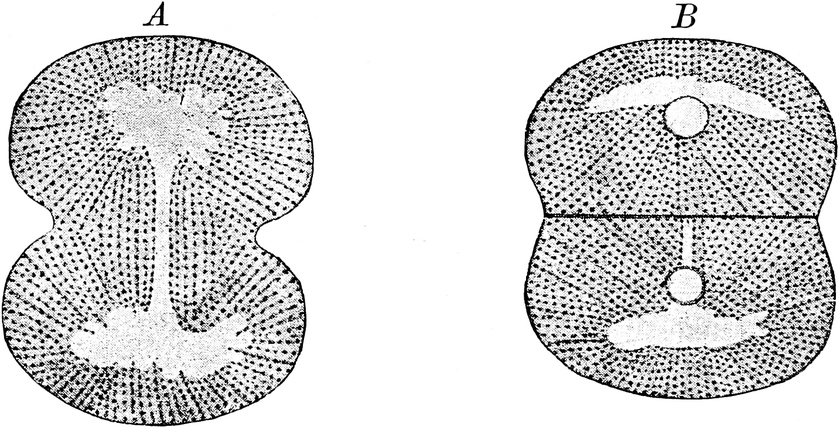
Fig. 90. Ei eines Seeigels im Moment der Theilung.
Aus O. H
ERTWIG
, Entwicklungsgesch. Fig. 29.
A
Eine Ringfurche schneidet in den Dotter ein und halbirt ihn in einer Ebene, welche rechtwinklig die Mitte der Kernachse und die Längsachse der Hantelfigur schneidet.
B
Ei eines Seeigels nach der Zweitheilung. In jedem Theilproduct ist ein bläschenförmiger Tochterkern entstanden. Die strahlige Anordnung des Protoplasma beginnt undeutlich zu werden. Beide Figuren sind nach dem lebenden Object gezeichnet.
Jetzt beginnt sich das Anfangs rein kuglige Ei in der Richtung der Axe der Hantelfigur etwas in die Länge zu strecken und in die Endphase der Theilung rasch einzutreten (Fig. 90 A). Entsprechend einer Ebene, welche man mitten durch die Hantelfigur senkrecht zu ihrer Längsaxe hindurchlegen kann, bildet sich an der Oberfläche des Eies eine Ringfurche aus. Dieselbe schneidet rasch tiefer in die Eisubstanz ein und zerlegt sie in kurzer Zeit in zwei gleiche Hälften, von denen eine jede die Hälfte der Spindel mit einer Gruppe der Tochtersegmente, die Hälfte der Hantelfigur und ein protoplasmatisches Strahlensystem erhält.
Gegen Ende der Durchschnürung grenzen die sich trennenden Eihälften nur noch an einer kleinen Stelle ihrer Oberfläche, in der Gegend des Hantelstieles, aneinander. Nach Beendigung der Theilung aber legen sie sich bald wieder mit ihren Theilungsflächen in ganzer Ausdehnung dicht aneinander und platten sich hier gegenseitig so ab, dass eine jede nahezu einer Halbkugel gleicht (Fig. 90 B).
Währenddem wird am lebenden Object auch der Kern wieder sichtbar. Etwa in der Gegend, wo Hantelstiel und Hantelkopf in einander übergehen, also in einiger Entfernung von dem Polkörperchen, tauchen einige kleine Vacuolen auf, die sich dadurch bilden, dass sich die Tochterkernsegmente mit Kernsaft durchtränken. Sie verschmelzen dann in sehr kurzer Zeit untereinander zu einem kugligen Bläschen, dem Tochterkern (Fig. 90 B). Die strahlige Anordnung des Protoplasma wird immer undeutlicher und macht, wenn die Zelle sich rasch wieder zur nächsten Theilung anschickt, einer neu sich ausbildenden Doppelstrahlung Platz.
Zur Untersuchung mit Reagentien und namentlich zum Studium der chromatischen Figuren sind die Echinodermeneier viel weniger als die Ascariseier geeignet. Es sind nämlich bei ihnen die schleifenförmigen Kernsegmente sehr klein und zahlreich, so dass sie selbst noch bei starken Vergrösserungen den Anblick kleiner Körnchen darbieten. So giebt uns Figur 91 die Darstellung einer Spindel nach Behandlung mit Reagentien und Farbstoffen; sie entspricht etwa dem in Figur 89 abgebildeten Zustand des lebenden Eies, zu dessen Ergänzung sie dienen kann.
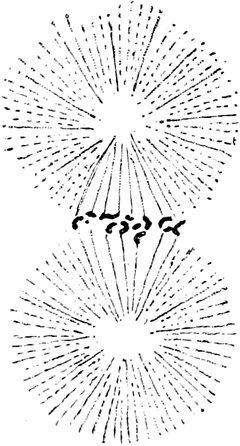
Fig. 91.
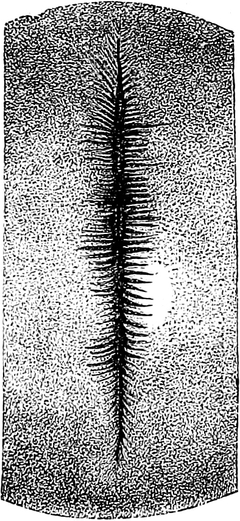
Fig. 92.
Fig. 91. Kernfigur eines Eies von Strongylocentrotus. 1 Stunde 20 Minuten nach der Befruchtung. Ei mit Reagentien behandelt.
Fig. 92. Stück von der oberen Hemisphäre eines Eies von Rana temporaria eine Viertelstunde nach dem Sichtbarwerden der ersten Furche, zur Zeit, wo der Strahlenkranz am schärfsten und schönsten ausgebildet ist. Nach MAX SCHULTZE Taf. I, Fig. 2.
Der Durchschnürungsprocess nimmt an sehr grossen Eiern, bei denen viel Dottermasse zu bewältigen ist, wie zum Beispiel bei den Froscheiern, geraume Zeit für sich in Anspruch, so dass die zweite Theilung schon beginnen kann, noch ehe die erste ganz vollendet ist. Bei den Froscheiern lässt sich hierbei eine interessante Erscheinung beobachten, welche in der Literatur unter dem Namen des Faltenkranzes (VI. 68) beschrieben worden ist (Fig. 92). Die erste Furche beginnt zunächst auf der nach oben gekehrten, schwarz pigmentirten Hemisphäre des Eies in einem kleinen Bezirk aufzutreten, sie nimmt, indem sie in die Substanz tiefer einschneidet, an Länge zu und dehnt sich im Laufe einer halben Stunde um die ganze Peripherie der Kugel aus, so dass sie auf der nach abwärts gekehrten, hellen Fläche am spätesten sichtbar wird und von hier aus auch am wenigsten tief in den Dotter eindringt. Bei ihrem Auftreten erscheint nun die erste Furche nicht glatt, sondern sie ist — am deutlichsten zur Zeit, wo sie ein Drittheil der Länge des Eiumfanges erreicht hat — mit zahlreichen kleinen Furchen besetzt, welche meist unter rechtem Winkel zu beiden Seiten in sie einmünden (60–100 auf jeder Seite, Fig. 92). So entsteht ein höchst anziehendes Bild, vergleichbar einem langen, tiefen Gebirgsthal, von welchem nach beiden Seiten kleine, kurze Seitenthäler in grosser Zahl abgehen. Je weiter die Theilung fortschreitet und die Hauptfurche tiefer wird, um so mehr nehmen die Seitenfurchen an Zahl ab und verschwinden endlich ganz.
Der so eigenthümlich und scharf ausgebildete Faltenkranz ist ein Phänomen, welches mit der Zusammenziehung des Protoplasma bei der Einschnürung zusammenhängt.
c) Theilung pflanzlicher Zellen.
Um die grosse Uebereinstimmung im Verlauf des Kerntheilungsprocesses im Thier- und Pflanzenreich zu veranschaulichen, diene der protoplasmatische Wandbeleg des Embryosackes von Fritillaria imperialis. Es ist dies ein zum Studium der Kernfiguren ausserordentlich geeignetes Object — nicht minder empfiehlt sich auch der Embryosack anderer Liliaceen — weil das Protoplasmahäutchen ungemein dünn ist und, zu geeigneten Zeiten untersucht, sehr viele Kerne auf verschiedenen Phasen der Theilung beherbergt (Strasburger VI. 71–73, Guignard VI. 23).
Der grosse, ruhende Kern besitzt ein feinmaschiges Liningerüst (Fig. 93 A), auf dessen Oberfläche zahlreiche, kleine Nucleïnkörnchen ziemlich gleichmässig vertheilt sind. Die Nucleolen sind in Mehrzahl vorhanden, sie sind von verschiedener Grösse und liegen zwischen den Maschen des Gerüstwerks, denselben anhängend. Bei der Vorbereitung zur Theilung lässt Strasburger sich das ganze Gerüstwerk in einige vielfach gewundene, ziemlich dicke Fäden umbilden; er beschreibt an ihnen eine ähnliche Querstreifung (C), wie sie Balbiani (II. 3) an Kernen von Chironomuslarven (Fig. 27) beobachtet hat, und erklärt dieselbe in der Weise, dass der Faden aus vielen, hintereinander aufgereihten Nucleïnscheiben aufgebaut sei, zwischen welche sich dünne Scheidewände von Linin trennend hineinschieben.
Im weiteren Verlauf löst sich die Kernmembran auf, die Nucleolen zerfallen in kleinere Körnchen und verschwinden, die Nucleïnfäden verkürzen und verdicken sich und liefern 24 Kernsegmente; es bildet sich eine typische, aus zahlreichen, feinsten Fasern zusammengesetzte Spindel aus, in deren Mitte sich die Kernsegmente zum Kranz anordnen (Fig. 93 D). An den beiden Enden der Spindel hat Guignard neuerdings auch zwei Polkörperchen mit ihren Strahlensphären nachgewiesen.
Auf dem Höhepunkte des Theilungsprocesses spalten sich die Kernsegmente ihrer Länge nach. Dann weichen die Tochtersegmente nach den beiden Polen zu, je 24 nach jeder Seite, auseinander (E) und liefern so die Grundlage für die Tochterkerne, die sich wieder in ähnlicher Weise, wie es für Salamandra maculata beschrieben wurde, anlegen. Sowie die Tochterkerne bläschenförmig werden, treten mehrere Nucleolen in ihnen auf.
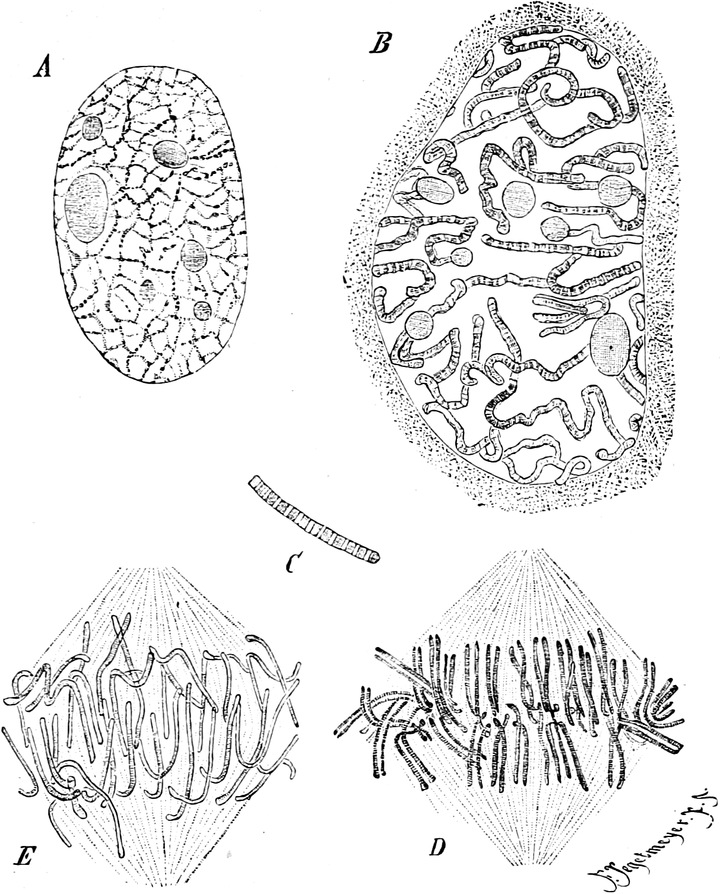
Fig. 93. Fritillaria imperialis. Ein ruhender Zellkern und Theilungsphasen der Zellkerne, dem freigelegten protoplasmatischen Wandbeleg der
Fig. 123
entnommen.
Nach S
TRASBURGER
, Botan. Prakticum Fig. 191.
A
Ein ruhender Zellkern,
B
ein dickfadiger, noch unsegmentirter Knäuel,
C
ein Stück dieses Kernfadens, stärker vergrössert,
D
eine Kernspindel mit längs gespaltenen Segmenten,
E
die Trennung und Umlagerung der Tochtersegmente.
A
,
B
,
D
und
E
800mal,
C
1100mal vergrössert.
Wenn sich bisher eine vollständige Uebereinstimmung mit der thierischen Kerntheilung ergeben hat, so zeigt sich uns jetzt am Schluss des ganzen Processes noch eine bemerkenswerthe und interessante Abweichung in der Entstehung der sogenannten Zellplatte. Zum Studium derselben sind Theilstadien von Pollenmutterzellen und andere Objecte geeigneter als der bisher der Beschreibung zu Grunde gelegte Embryosack von Fritillaria, da es bei diesem nach der Kerntheilung nicht gleich zu einer Zelltheilung kommt.
Die folgende Darstellung bezieht sich daher auf Pollenmutterzellen von Fritillaria persica (Fig. 94). Wenn bei diesen die Tochtersegmente in zwei Gruppen auseinandergewichen sind, so spannen sich zwischen ihnen feine Verbindungsfäden aus, die Strasburger (VI. 73) von den mittleren Abschnitten der Spindelfasern ableitet (Fig. 94 f). In der Mitte der Verbindungsfäden entstehen nach kurzer Zeit kleine Anschwellungen, die als glänzende Körner erscheinen (Fig. 94 g). Sie sind höchst regelmässig so angeordnet, dass sie auf dem optischen Durchschnitt in einer Reihe nebeneinander zu liegen kommen. In ihrer Gesammtheit stellen sie also eine aus Körnchen zusammengesetzte, in der Mitte zwischen den beiden Tochterkernen in der Theilungsebene gelegene Scheibe dar, welcher Strasburger den Namen „Zellplatte“ gegeben hat. Ein Rudiment derselben bei thierischen Zellen glaubt Flemming (VI. 13II) in den oben (S. 152) beschriebenen, an einzelnen Objecten aufgefundenen Zwischenkügelchen wieder zu erkennen.
Die Zellplatte steht nun bei den Pflanzen zur Bildung der Cellulosescheidewand, mit welcher der ganze Theilungsprocess seinen letzten Abschluss findet, in inniger Beziehung (Fig. 94 h). „Sie dehnt sich schliesslich,“ wie Strasburger beschreibt, „über den ganzen Durchmesser der Zelle aus, ihre Elemente verschmelzen und bilden eine Scheidewand, welche die Mutterzelle in zwei Tochterzellen halbirt.“ Ein dünnes Cellulosehäutchen lässt sich bald in ihr nachweisen. Währenddem verschwinden die Verbindungsfäden, zunächst in der Nähe der Tochterkerne, dann auch im Bereich der Scheidewand aus Cellulose.
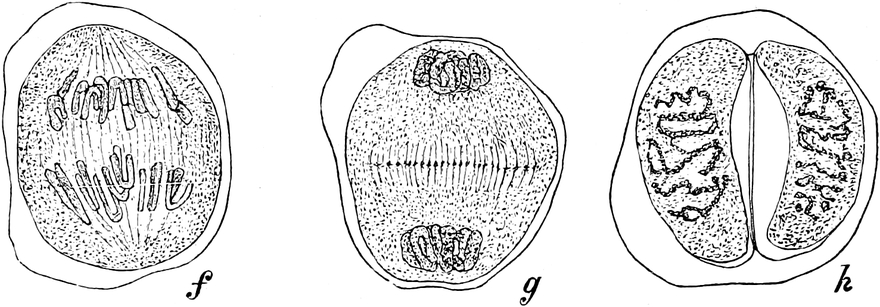
Fig. 94. Drei Theilstadien der Pollenmutterzellen von Fritillaria persica.
Nach S
TRASBURGER
Fig. 188.
f
Auseinanderweichen der Tochtersegmente.
g
Bildung der Tochterknäuel und der Zellplatte.
h
Verlauf des Kernfadens in den Tochterkernen und ausgebildete Cellulosescheidewand. 800mal vergrössert.
Die kleinen, specifischen Stofftheilchen, die sich als Körner zur Zellplatte in der Mitte der Verbindungsfäden ansammeln, können vielleicht nach der früher entwickelten und später noch weiter auszuführenden Auffassung als Zellhautbildner bezeichnet werden.
d) Historische Bemerkungen und strittige Fragen der Kernsegmentirung.
Am Anfang der 70er Jahre wurden durch die Arbeiten von Bütschli (VII. 6), Strasburger (VI. 71), Hertwig (VI. 30a) und Fol (VI. 19a) die Veränderungen, welche der Kern bei der Theilung erfährt, in ihren gröberen Zügen im Ganzen richtig dargestellt. Es wurde die faserige Kernspindel, die Ansammlung glänzender, in Carmin sich färbender Körner in der Mitte der Spindel (Kernplatte von Strasburger), die hierauf folgende Vertheilung der Körner in zwei Gruppen oder in zwei Tochterkernplatten und die Entstehung der bläschenförmigen Tochterkerne aus den letzteren entdeckt. Ebenso waren die Strahlenfiguren (Sterne, Amphiaster, Fol) an den Enden der Spindel bekannt, und von mir und Fol waren in denselben auch stärker glänzende Körnchen, die Polkörperchen, beschrieben, deutlich abgebildet und als Attractionscentren gedeutet worden. Es war somit endgültig festgestellt, dass bei der Zelltheilung keine Kernauflösung (Karyolyse, Auerbach VI. 2a), sondern eine Kernmetamorphose stattfindet. Indem ich ferner durch meine Untersuchung der Eireife, namentlich bei Asteracanthion und Nephelis, und durch die Entdeckung der inneren Befruchtungserscheinungen gleichzeitig bewies, dass der Eikern keine Neubildung ist, sondern von geformten Substanztheilchen des Keimbläschens abstammt und sich mit dem vom Kopf des Samenfadens (dem umgewandelten Kern der Samenzelle) abzuleitenden Samenkern zum Theilkern vereinigt, ergab sich der wichtige Lehrsatz, dass, wie alle Zellen des thierischen Organismus von der befruchteten Eizelle, so auch alle Kerne desselben vom Kern der Eizelle in ununterbrochener Folge abzuleiten sind. (Omnis nucleus e nucleo. Flemming VI. 13II.)
Das in den genannten Arbeiten aufgestellte Kern- und Zelltheilungsschema hat sich seitdem im Wesentlichen als richtig herausgestellt, zugleich aber hat es die Grundlage für zahlreiche weitere Entdeckungen und für zahlreiche Aufgaben gebildet, die ihrer Lösung zum Theil noch immer harren. Die Aufgaben lassen sich kurz in den einen Satz zusammenfassen: Es galt und es gilt zum Theil auch noch jetzt, die bei der Kerntheilung stattfindenden und in charakteristischen Figuren in die Erscheinung tretenden Bewegungen der einzelnen mikrochemisch unterscheidbaren Stofftheilchen des Kerns und der Theilungsfiguren noch genauer in allen Einzelheiten zu verfolgen: also die Umlagerungen der Nucleïnkörnchen, des Liningerüstes, der Spindelfasern, der Polkörperchen, der Nucleolen etc. — Fortschritte in dieser Richtung sind, abgesehen von der Entdeckung günstiger Beobachtungsobjecte, wie der Gewebskerne der Salamanderlarven (Flemming) und der Eier von Ascaris megalocephala (van Beneden), durch den Gebrauch der neu construirten Oelimmersionen und Apochromate und durch die bessere Handhabung der Reagentien und Farbstoffe ermöglicht worden.
Am weitesten ist die Forschung zur Zeit in dem Studium der durch die Umlagerungen des Nucleïns erzeugten Figuren fortgeschritten, was in erster Linie den vortrefflichen Untersuchungen von Flemming (VI. 12–17) und den sich anschliessenden, classischen Arbeiten von van Beneden (VI. 4), Rabl (VI. 53), Boveri (VI. 6), Strasburger (VI. 71–73), Guignard (VI. 23) zu verdanken ist.
Flemming, der besonders die Kerntheilung in Gewebszellen von Salamanderlarven verfolgt hat, unterschied mit grösserer Schärfe an der Kernfigur den achromatischen und den chromatischen Theil, die sich nicht färbenden Spindelfasern und Plasmastrahlungen und die ihnen oberflächlich aufliegenden, gefärbten Kernschleifen oder Kernsegmente. An letzteren machte er auch zuerst die wichtige Entdeckung, dass sie sich der Länge nach spalten. Auf diese interessante Erscheinung fiel darauf das klärende Licht, als Heuser, Guignard, van Beneden und Rabl unabhängig voneinander an verschiedenen Objecten fanden, dass die Hälften der gespaltenen Fäden nach den Kernpolen auseinander rücken und die Grundlage für die Tochterkerne abgeben.
Viel weniger genau erforscht sind die Substanzumlagerungen, die mit der Entstehung der Spindel und der Polkörperchen und mit der Auflösung der Nucleolen zusammenhängen.
Was die Spindel betrifft, so gehen die Ansichten der Forscher nicht nur über die Herkunft, sondern sogar über den Bau derselben wesentlich auseinander. Während die ersten Beobachter der Ansicht waren, dass die Spindel aus feinsten Fäserchen zusammengesetzt sei, die sich continuirlich von Pol zu Pol erstrecken, lassen van Beneden (VI. 4b) und Boveri (VI. 6) die letzteren im Aequator unterbrochen sein und stellen der alten die neue Lehre entgegen, dass die Spindel aus zwei gesonderten Halbspindeln aufgebaut sei (Fig. 95). Die Halbspindeln lassen sie mit den Enden ihrer Fasern sich direct an die Kernsegmente ansetzen; sie begründen darauf eine Mechanik der Kerntheilung, indem sie annehmen, dass nach der Spaltung der Segmente in die Tochtersegmente diese durch eine Verkürzung oder Contraction der an ihnen anhaftenden Spindelfasern wie durch Muskelfäden nach den entgegengesetzten Polen hingezogen werden.
Demgegenüber halten Flemming (VI. 14) für die Gewebszellen von Salamandra und Strasburger (VI. 72) für pflanzliche Objecte auch neuerdings noch ihre älteren Angaben aufrecht, dass es Spindelfasern giebt, welche von Pol zu Pol ununterbrochen durchlaufen. Besonders beweisend aber für die einheitliche Anlage der Spindel sind die früher erwähnten Beobachtungen von Hermann, die an meine Beschreibung und Abbildung von der Spindelbildung aus dem Keimbläschen von Asteracanthion erinnern. (VI. 30a, Taf. VIII. Fig. 3 u. 4.) In beiden Fällen bildet sich zwischen den noch nahe zusammengelegenen Polen (Fig. 96) ein sehr kleines, einheitliches Spindelchen aus, zu einer Zeit, wo die Kernsegmente noch weit entfernt von ihm liegen und es in keiner Weise verdecken; allmählich erst wächst es durch beträchtliche Verlängerung der Fasern zu der definitiven Grösse heran.
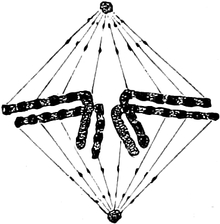
Fig. 95.
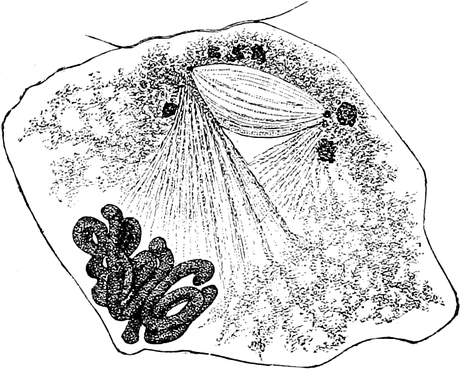
Fig. 96.
Fig. 95. Zusammensetzung der Spindel aus zwei Halbspindeln, deren Fasern sich an die Tochtersegmente ansetzen. Nach V. BENEDEN und NEYT Taf. VI, Fig. 8.
Fig. 96. Kern einer Samenmutterzelle von Salamandra maculata in Vorbereitung zur Theilung. Anlage der Spindel zwischen den beiden Polkörperchen. Nach HERMANN Taf. 31, Fig. 7.
Die entgegengesetzten Auffassungen finden nun aber, wie auch schon Hermann hervorgehoben hat, darin ihre Erklärung, dass das, was van Beneden und Boveri Halbspindeln nennen, etwas ganz Anderes ist als die Spindel der älteren Autoren. Van Beneden und Boveri verstehen darunter einen Theil der von den Polen ausgehenden protoplasmatischen Strahlenfigur, nämlich alle diejenigen Fäden, die im Aequator in die Nähe der Kernsegmente treten. Die eigentliche Spindel liegt aber erst im Innern dieser Protoplasmafäden und der Kernsegmente. Hermann giebt ihr daher zur Unterscheidung von der van Beneden’schen Spindel den Namen Centralspindel. Der Zusatz „Central“ erscheint mir aber ganz entbehrlich, einmal weil der Name Spindel von jeher für diesen Bestandtheil der Kernfigur vergeben ist, weshalb die sich zu den Kernsegmenten begebenden, protoplasmatischen Polstrahlen, welche von van Beneden und Boveri als Halbspindeln beschrieben worden sind, mit einem andern Namen benannt werden müssten, sofern man einen solchen für erforderlich hält. Zweitens würde für diese Bildung überhaupt der Name Spindel nicht einmal mehr zutreffend sein.
Strittig ist ferner die stoffliche Herkunft der Spindelfasern. Manche Forscher sind geneigt, sie vom Protoplasma herzuleiten, das nach Auflösung der Kernmembran zwischen die Nucleïnfäden eindringe (Strasburger VI. 72, Hermann VI. 29 etc.). Ich habe früher den Standpunkt vertreten und nehme ihn auch jetzt noch ein, dass, abgesehen von den Polstrahlungen, die dem Protoplasmakörper der Zelle angehören, die verschiedenen Structurtheile der Kernfigur von den einzelnen Substanzen des ruhenden Kerns abstammen. Die stoffliche Grundlage für die Spindel und die später aus ihr hervorgehenden Verbindungsfäden suche ich in dem Liningerüst. Auch Flemming vertritt nach seinen Beobachtungen diese Ansicht, welcher auch die mikrochemischen Untersuchungen von Zacharias nicht im Wege stehen. Hauptsächlich aber scheinen mir folgende Thatsachen zu Gunsten dieser Ansicht in die Wagschale zu fallen:
Bei vielen einzelligen Organismen bleiben die Kerne auf den einzelnen Phasen der Theilung durch eine feine Membran von dem Protoplasmakörper getrennt, bei Euglypha (Schewiakoff VI. 65b), bei den Kerntheilungen der Infusorien und Actinosphärien (Rich. Hertwig VI. 82, 83). Hier kann es demnach keinem Zweifel unterliegen, dass die Spindelfasern aus der achromatischen Substanz des Kerns selbst ihren Ursprung genommen haben. Solche Fälle kommen hie und da auch im Thierreich vor. Bei einzelnen Mollusken (Pterotrachea, Phyllirhoë) haben Fol (VI. 19a) und ich (VI. 30a) beobachtet, dass die Polspindel im Innern des Keimbläschens (Fig. 97 A u. B), welches hier übrigens von geringer Grösse ist, angelegt wird, solange noch die Kernmembran vorhanden ist. Die Annahme, dass in diesem Fall Protoplasma von aussen in den Kernraum hineingedrungen sei, will mir wenigstens als eine gezwungene erscheinen. Ferner halte ich es nicht für zweifelhaft, dass die Verbindungsfäden, welche sich in den sich theilenden Samenmutterzellen von Ascaris zwischen den auseinander weichenden Kernsegmenten ausspannen, vom Liningerüst herrühren. Eine typische Spindelbildung konnte ich an diesem Object allerdings nicht beobachten.
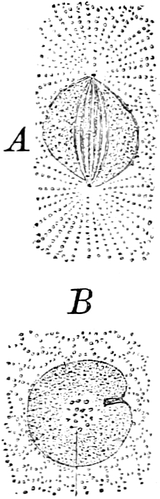
Fig. 97.
A
In Umbildung zur Spindel begriffenes Keimbläschen aus einem frisch abgelegten Ei von Phyllirhoë.
Essigsäurepräparat. H
ERTWIG
Taf. XI, Fig. 2.
B
Keimbläschen aus dem frisch abgelegten Ei von Phyllirhoë, in welchem die Spindel auf dem optischen Querschnitt gesehen wird.
Essigsäurepräparat. H
ERTWIG
Taf. XI, Fig. 6.
Als ein strittiger Punkt muss auch die Herkunft der Polkörperchen bezeichnet werden. Schon am Anfang der siebenziger Jahre beschrieben und abgebildet, sind dieselben als gesonderte Bestandtheile der Kerntheilungsfigur erst durch van Beneden (VI. 4a) zur Geltung gebracht worden, indem es diesem Forscher gelang, sie durch Färbung (mit Hülfe von Anilinfarben in ⅓ Glycerin gelöst) gegen die Umgebung schärfer zu differenziren. Bald darauf machten gleichzeitig und unabhängig voneinander van Beneden und Boveri (VI. 4b, 6) die wichtige Entdeckung, dass sich die Polkörperchen durch Selbsttheilung vermehren, was ich später auch für die Samenzellen von Ascaris (VI. 34) bestätigen konnte. Van Beneden hatte aus seinen Beobachtungen den Schluss gezogen, dass die Polkörperchen ebenso wie die Kerne permanente Organe der Zelle seien und sich jederzeit im Protoplasma als selbständige Gebilde vorfinden müssten. Dieser Ausspruch fand eine gewisse Stütze in den Entdeckungen von Flemming (VI. 17), Solger (VI. 70) und Heidenhain (II. 16), dass in manchen Zellarten, wie Lymphkörperchen, Pigmentzellen, ein Polkörperchen mit einer Strahlensphäre im Protoplasma auch zu einer Zeit nachzuweisen ist, wo der oft weiter abseits gelegene Kern sich in voller Ruhe befindet. (Siehe Seite 47, Fig. 34–36.)
In einer anderen Richtung wurde die Kenntniss der Polkörperchen durch das Studium des Befruchtungsprocesses wesentlich gefördert. Schon 1884 sprach ich die Ansicht aus (VI. 85), dass bei der Befruchtung ein Polkörperchen durch den Samenfaden in das Ei eingeführt werde und dass es allem Anschein nach das sogenannte Mittelstück oder der Hals sei, welcher in der dem Samenkern vorausgehenden Strahlung das Attractionscentrum abgebe. Ich verglich dasselbe „der an den Enden der Kernspindel vorhandenen, geringen Quantität wenig tingirbarer, aber vom Protoplasma unterscheidbarer Substanz (der Polsubstanz und dem Polkörperchen)“, und ich kam so zu dem Schluss, dass, „wenn der Vergleich richtig ist, die bei der Befruchtung und Zelltheilung auftretenden Strahlungen des Protoplasma eine gemeinsame Ursache in der Anwesenheit ein und derselben Substanz haben“.
Richard Hertwig (VI. 84) sprach sich wiederholt über die Gleichartigkeit der Polsubstanz, des Mittelstücks des Samenfadens und der Substanz der echten Nucleolen aus. Boveri (VI. 7) liess gleichfalls den Samenfaden ein Polkörperchen oder Centrosoma in das Ei hineintragen. Die definitive Entscheidung haben die später zu beschreibenden wichtigen Entdeckungen von Fol (VII. 14) und von Guignard (VI. 23b) gebracht. Hiernach besitzt sowohl der Eikern als der Samenkern ein eigenes Polkörperchen. Während die Kerne verschmelzen, theilen sich die Polkörperchen, und ihre Theilhälften verschmelzen darauf zu zwei Polkörperchen, welche die Enden der Theilspindel einnehmen.
Trotz dieser Entdeckungen ist eine Frage noch nicht aufgeklärt. Sind die Polkörperchen als permanente Zellorgane zum Protoplasma hinzuzurechnen, sind sie während der Ruhe dauernd in dasselbe eingeschlossen und treten sie nur während der Theilung zum Kern in eine Wechselbeziehung oder lassen sich die Polkörperchen als besondere Elementartheile des Kerns betrachten, wie die Kernsegmente, Spindelfasern, Nucleolen u. s. w. In letzterem Falle müssten sie während der Ruhe in dem Kern selbst eingeschlossen sein und nur während der Theilung sich zum Protoplasma in Beziehung setzen.
Das zur Zeit vorliegende Beobachtungsmaterial reicht zur Beantwortung dieser Frage noch nicht aus. Die Bewegungen der Polsubstanz vor, während und nach der Kerntheilung so genau zu verfolgen, wie es für das Nucleïn gelungen ist, ist mit sehr grossen Schwierigkeiten verbunden, da die Polkörperchen ausserordentlich klein sind und da man sie noch nicht durch bestimmte Farbstoffe mit Sicherheit unter allen Verhältnissen erkennbar machen kann. Während der Theilstadien selbst werden die Polkörperchen vornehmlich durch den Strahlenkranz, mit welchem sie sich umgeben, für uns unterscheidbar, während der Ruhe aber ist von einem Strahlenkranz nichts wahrzunehmen.
Für eine Abstammung der Polkörperchen aus dem Kern lässt sich geltend machen, erstens, dass man in der ruhenden Zelle, wenige Fälle ausgenommen, im Protoplasma etwas ihnen Entsprechendes nicht auffinden kann; zweitens dass bei Beginn der Theilung die Polkörperchen unmittelbar an der Oberfläche der Kernmembran auftreten (Fig. 98) und dann erst weiter vom Kern weg in das Protoplasma hineinrücken; drittens, dass bei dem Auftreten der Polkörperchen die Kernmembran häufig eingefallen ist, als ob aus einer kleinen Oeffnung Kernsaft ausgetreten sei; viertens dass an manchen Objecten das Auftreten der Polkörperchen mit dem Zerfall der Nucleolen zeitlich zusammenfällt.
Mich hat die Frage nach der Herkunft der Polkörperchen oft beschäftigt und ich habe viel vergebliche Mühe auf sie verwandt, zuletzt noch in meiner Untersuchung über Ei- und Samenbildung bei Nematoden. Eine Gewissheit habe ich mir nicht verschaffen können. Wenn zur Zeit wohl die Mehrzahl der Forscher die Polkörperchen als zum Protoplasma gehörig betrachtet, so möchte doch die andere, oben erwähnte Möglichkeit eines nucleären Ursprungs nicht ganz ausser Acht zu lassen sein.
Ein letzter noch wenig aufgeklärter Punkt ist das Schicksal der Nucleolen, ihr Verschwinden bei Beginn der Kerntheilung und ihr Wiederauftreten in den Tochterkernen. Was für Substanzumlagerungen haben hierbei stattgefunden? Die Frage ist ebenfalls keine leicht zu entscheidende, um so mehr, als in manchen Fällen die Nucleolen aus zwei verschiedenen chemischen Substanzen zusammengesetzt sind. (Siehe Seite 43.)
Mir scheint nun, abgesehen von den oben erörterten Beziehungen zu den Polkörperchen, dass die Nucleolen in der Vorbereitung zur Theilung in kleine Substanztheilchen zerlegt und auf die Kernsegmente vertheilt werden.
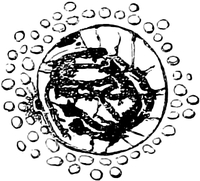
Fig. 98.
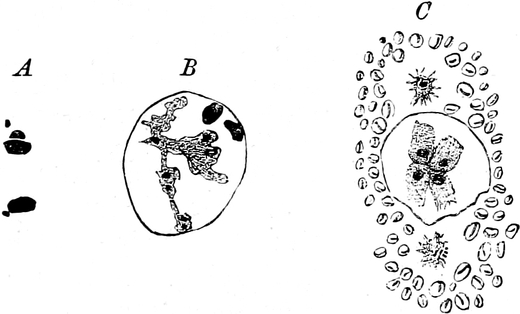
Fig. 99.
Fig. 98. Kern einer Samenmutterzelle von Ascaris megalocephala bivalens. Die Nucleïn-Substanz ist in Fäden angeordnet, die in zwei Gruppen auseinander weichen. Erstes Auftreten der Polkörperchen. Rückbildung des Nucleolus. Taf. III, Fig. 7.
Fig. 99. A Nucleolen mit sich ablösenden Körnchen. Taf. III, Fig. 4. B Kern einer Samenmutterzelle von Ascaris megalocephala bivalens aus dem Ende der Wachsthumszone. Aus schwachem Flemming’schen Chromosmiumgemisch. Färbung mit Säurefuchsin. Taf. III, Fig. 5. C Kern einer Samenmutterzelle von Ascaris megalocephala bivalens aus der Mitte der Theilzone. Schwaches Flemming’sches Gemisch von Chromosmiumsäure. Färbung mit Säurefuchsin. Taf. III, Fig. 9.
Bei den Samenmutterzellen von Ascaris, die mit schwachem Flemming’schen Gemisch gehärtet sind, verliert das Nucleïn seine Färbbarkeit, während die Nucleolen in Säurefuchsin dunkelroth tingirt werden. (Fig. 99 A. u. B.) Hier sah ich nun, dass in den Vorbereitungsstadien der Nucleolus in mehrere Stücke zerfällt, dass von diesen sich kleinste Kügelchen ablösen, dass solche hochroth gefärbte Kügelchen sich auch auf den Kernfäden aufgelagert finden. Wenn im weiteren Verlauf die Kernsegmente fertig angelegt sind und der Nucleolus ganz verschwunden ist, (Fig. 99 C), dann sind erstens an der Oberfläche des Kerns die Polkörperchen sichtbar geworden, und zweitens ist in jedes Kernsegment ein dunkelroth gefärbtes Korn eingeschlossen, das nach seinem Verhalten gegen Farbstoffe wie Substanz des Nucleolus aussieht.
Für die Aufnahme von Nucleolarsubstanz in die Kernsegmente, dann aber wahrscheinlich in einer viel feineren Vertheilung, sprechen noch einige interessante Farbstoffreactionen. Wie Wendt bei Pflanzen gefunden hat, färbt sich das Nucleïngerüst der Kerne aus dem Embryosack mehrerer Liliaceen nach Behandlung mit Fuchsin-Jodgrün blaugrün, die Nucleolen roth. Auf den Theilstadien dagegen, in denen die Nucleolen aufgelöst sind, färben sich die Kernsegmente violett. Wenn später dann in den Tochterkernen die Nucleolen wieder erscheinen, nehmen die Kernfäden abermals die blaugrüne Farbe an. Went erklärt den Farbenwechsel dadurch, dass während der Theilung die Kernsegmente Nucleolarsubstanz in sich aufnehmen und nach der Theilung zur Bildung der Nucleolen in den Tochterkernen wieder abgeben.
Bei thierischen Zellen haben Flemming (VI. 13. 1891) und Hermann einen entsprechenden, mit der Auflösung und dem Wiedererscheinen der Nucleolen parallel gehenden Farbenwechsel der Kernsegmente bei Doppeltinctionen mit Safranin-Haematoxylin, Safranin-Mauveïn, Safranin-Gentiana etc. wahrgenommen. „Es scheint mir bemerkenswerth,“ erklärt Flemming bei dieser Gelegenheit, „dass in denjenigen Stadien, wo noch Nucleolen vorhanden oder eben erst verschwunden sind oder eben wieder auftreten, die Neigung der chromatischen Figur zur Blaufärbung vorliegt, während die Formen, in welchen sie völlig deconstituirt sind, sich rein safranophil verhalten, wie es ja die Nucleolen selbst sind.“
2) Die Kernzerschnürung (directe Kernvermehrung, Fragmentirung, Amitose, amitotische Theilung).
Im Gegensatz zu den complicirten, mit Segmentirung verbundenen Vorgängen kann sich die Kerntheilung bei einigen wenigen Zellarten in einer scheinbar sehr einfachen Weise vollziehen, die man als Fragmentirung oder Kernzerschnürung bezeichnet. Hier kommt es nicht zur Entstehung von Spindelfasern, Kernsegmenten und Protoplasmastrahlungen. Vielmehr verläuft die Kernzerschnürung mehr in der von älteren Histologen schematisch dargestellten Weise. Sie ist am leichtesten an den Lymphkörperchen zu beobachten, sowohl am lebenden, als an dem mit Reagentien fixirten Object.
Taugliche Präparate lassen sich in verschiedener Weise herstellen: Entweder man saugt einen Tropfen Lymphe aus dem dorsalen Lymphsack des Frosches mit einer feinen Capillarröhre ein, bringt denselben auf einen Objectträger und bedeckt mit einem Deckgläschen, dessen Ränder, um die Verdunstung zu verhüten, mit Paraffin umsäumt werden. Oder man verfertigt sich nach der Methode von Ziegler kleine Glaskammern, indem man zwei kleingeschnittene Deckgläschen an ihren vier Ecken oder an zwei Seiten fest verbindet in der Weise, dass ein capillarer Spaltraum zwischen ihnen frei bleibt. Man legt dann die Glaskammer für einen oder für mehrere Tage in den dorsalen Lymphsack des Frosches, während welcher Zeit Lymphzellen in grosser Zahl zwischen die beiden Deckgläschen einwandern und Veränderungen eingehen. Drittens kann man nach der von Arnold empfohlenen Methode ein dünnes, durchsichtiges Scheibchen von Hollundermark in den Lymphsack bringen. Nach wenigen Stunden haben sich an seiner Oberfläche zahlreiche Leukocyten festgesetzt, die sich zur Untersuchung eignen. Nach längerer Zeit bilden sich um die Plättchen von Hollundermark durch Gerinnung dünne Fibrinhäutchen, die sich abziehen lassen und mit den ansitzenden Zellelementen ebenfalls zur Beobachtung geeignet sind.
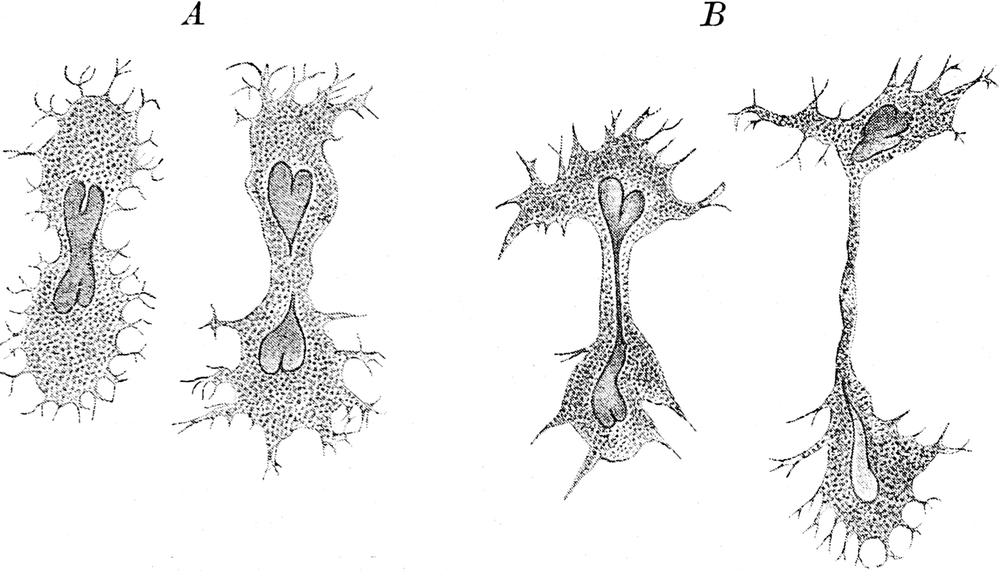
Fig. 100.
A
Wanderzelle aus einem Hollunderplättchen, welches 10 Tage im Lymphsack eines Frosches gelegen hatte.
Zu Anfang der Beobachtung war der Kern in seiner Mitte etwas eingeschnürt, an den Enden eingefurcht; schon nach 5 Minuten hatte sich die Theilung des Kerns vollzogen. Nach A
RNOLD
Taf. XII, Fig. 1.
B
Wanderzelle in Theilung.
Nach 30 Minuten ist aus der Figur
A
die Figur
B
entstanden. Nach A
RNOLD
Taf. XII, Fig. 3.
Bei einer Temperatur, welche zwischen 16° und 18° schwankte, hat Ranvier (VI. 54) alle Erscheinungen der Theilung einer Lymphzelle im Verlauf von drei Stunden sich abspielen sehen. Arnold (VI. 1) und Andere haben seine Angaben bestätigt und vielfach erweitert. Der bläschenförmige Kern kann seine Form aktiv verändern und sich mit Buckeln und Höckern bedecken. An solchen Kernen treten dann häufig Einschnürungen auf, die einen Zerfall in 2, 3 und mehr Stücke herbeiführen. (Fig. 100, A. und B.) Die Kernstücke rücken auseinander und bleiben nicht selten noch längere Zeit durch feine Verbindungsfäden im Zusammenhang. Häufig folgt der Kerntheilung die Zelltheilung auf dem Fuss, wie die Figuren 100 A. u. B. veranschaulichen. Zwischen den auseinandergerückten, durch einen feinen Faden verbundenen Kernhälften schnürt sich auch der Protoplasmakörper ein. Seine beiden Hälften bewegen sich durch Ausstrecken zahlreicher, amöboider Fortsätze nach entgegengesetzten Richtungen auseinander. Hierbei kann sich zuweilen die Verbindungsbrücke zwischen ihnen, nachdem schon die beiden Tochterkerne sich getrennt haben, zu einem langen, feinen Faden ausziehen.
„Die zeitliche Aufeinanderfolge der einzelnen Theilungsabschnitte ist bei der Fragmentirung sehr häufig keine gesetzmässige; vielmehr können Kerne und Zellen in dem einen oder anderen Stadium länger verharren.“ (Arnold.)
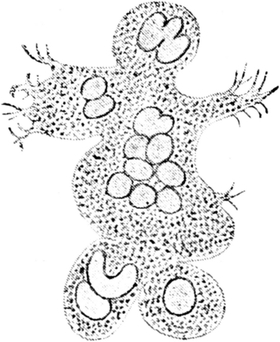
Fig. 101. Eine grosse vielkernige Zelle zeigt randständige Abschnürung kernhaltiger Zellen.
Nach A
RNOLD
Taf. XIV, Fig. 13.
Dadurch, dass nach der Fragmentirung des Kerns die Zelltheilung ausbleibt, können vielkernige Zellen entstehen. Zuweilen erreichen dieselben bei entzündlichen Processen eine beträchtliche Grösse und werden als Riesenzellen beschrieben (Fig. 101). Die kleinen Kerne zeigen die verschiedenste Form und Anordnung. Bald sind sie kuglige Bläschen, bald ovale, wurstförmige oder gelappte Körper, bald sind sie gleichmässig und einzeln im Protoplasma vertheilt, bald ketten- und kranzförmig aneinander gereiht; bald finden sich auch isolirte Kernchen neben aneinander gereiht vor. Im weiteren Verlauf können sich von den Riesenzellen wieder kleine Zellchen nach Beobachtungen von Arnold ablösen. Die Ablösung vollzieht sich in doppelter Weise. „Bald zeigt die Riesenzelle kolbige, kernhaltige Ausläufer, welche, nachdem sie zuvor wiederholt eingezogen und wieder ausgesendet worden waren, später oder früher abgeschnürt werden, bald erfolgt die Abtrennung bei schwacher oder vollständig mangelnder Bewegung des Körpers.“
Ausser an Lymphkörperchen sind Zelltheilungen, die unter den Erscheinungen der Kernzerschnürung verlaufen, auch an Epithelzellen, namentlich häufig bei Arthropoden, wahrgenommen worden, so durch Johnson (VI. 41) und Blochmann (VI. 86) in den Embryonalzellen des Scorpions, durch Platner (VI. 52) in den Zellen Malpighi’scher Gefässe und an anderen Objecten durch andere Forscher.
Eine eigenthümliche Art der Kernzerschnürung ist von Göppert (VI. 22), Flemming (VI. 16), von Kostanecki (VI. 46) u. A. beschrieben worden. Das geeignetste Untersuchungsobject hierfür scheint das lymphoide Gewebe zu sein, welches die Amphibienleber überzieht. Nach der Darstellung von Göppert erhält der Kern einer Lymphzelle eine trichterförmige Einstülpung, die sich so lange vertieft, bis sie die entgegengesetzte Oberfläche der Kernmembran erreicht und hier mit einer feinen Oeffnung zur Ausmündung gelangt. (Fig. 102 A. u. B.) Auf diese Weise entstehen von einem engen Kanal durchbohrte, ringförmige Kerne. Indem der Ring an einer Stelle erst eingeschnürt und dann durchgeschnürt wird, bildet er sich in einen Halbring um, der häufig durch oberflächliche Einschnürungen in mehrere Abtheilungen gesondert wird. (Fig. 102 A.) Durch weitere Zerlegung kann er in eine grössere Anzahl kleinerer Kernchen zerfallen, die zuweilen noch durch feine Verbindungsbrücken längere Zeit in Zusammenhang bleiben. Auch an anderen Orten sind derartige „Lochkerne“, wie z. B. im Epithel der Harnblase vom Frosch, durch Flemming (VI. 16) beobachtet worden. Zu einer Theilung des Zellenleibes scheint es aber in diesen Fällen nicht zu kommen.
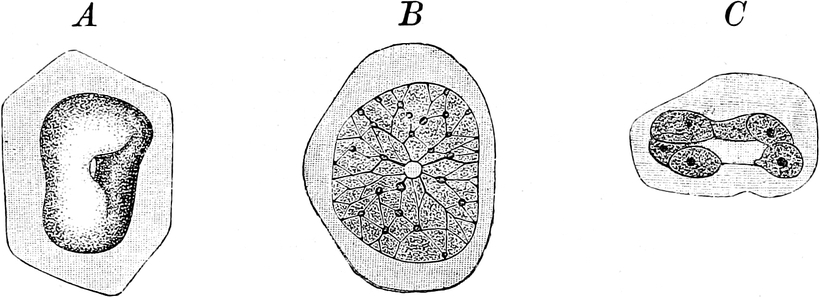
Fig. 102.
A
Seitliche Ansicht eines Lochkerns aus der lymphatischen Randschicht der Leber von Triton alpestris.
Der Kern ist in der Richtung der Durchbohrung abgeplattet. Nach G
ÖPPERT
Taf. XX, Fig. 4.
B
Lochkern mit deutlich radiärer Anordnung des Nucleïngerüstes.
Nach G
ÖPPERT
Taf. XX, Fig. 3.
C
Ringförmiger, in mehrere Abschnitte durch Einschnürung zerlegter Kern einer Lymphzelle.
Nach G
ÖPPERT
Taf. XX, Fig. 10.
Wie im Thierreich tritt Kernzerschnürung hie und da auch im Pflanzenreich auf. Zu ihrer Untersuchung empfehlen sich einzelne Objecte, wie die langen Internodialzellen der Characeen oder ältere Zellen höher organisirter Pflanzen. So beschreibt Strasburger (II. 41) aus älteren Internodien von Tradescantia mehr oder weniger unregelmässige Kerne, die in verschieden grosse und verschieden gestaltete Abschnitte eingeschnürt sind. „Ist der Einschnitt einseitig, so erscheinen die Zellkerne nierenförmig, bei allseitiger Einschnürung bisquitförmig oder auch unregelmässig gelappt. In manchen Fällen haben sich die Theilstücke völlig getrennt und berühren sich entweder noch oder liegen in grösserer oder geringerer Entfernung voneinander. Die Zahl der so getrennten Kerne in einer Zelle kann bis auf 8 oder 10 anwachsen.“ Bei Characeen gewinnen die Kerne durch mehrfache Einschnürungen vorübergehend ein perlschnurförmiges Aussehen, bis die Durchschnürung, die sehr träge abläuft, beendet ist.
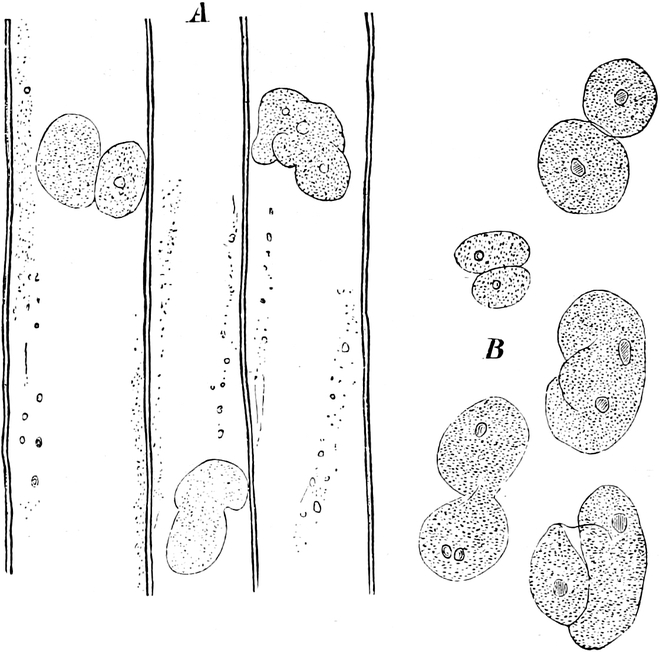
Fig. 103. Tradescantia virginica. Zellkerne älterer Internodien in directer Theilung.
Nach S
TRASBURGER
Fig. 193.
A
nach dem Leben,
B
nach Essigsäure-Methylgrün-Behandlung.
Aus Einschnürungen an den Kernen darf man übrigens nicht gleich auf den Beginn einer directen Theilung schliessen, solange für das bestimmte Object eine derartige Vermehrungsweise nicht durch Beobachtung aller einzelnen Stadien nachgewiesen ist. So findet man in Ureiern und in Ursamenzellen häufig maulbeerförmige oder unregelmässig gelappte Kerne. Doch scheint es hier nicht zu einer Sonderung in Tochterkerne auf dem Wege der Zerschnürung zu kommen, so dass auch die Lappung nicht als eine Vorbereitung zu einer directen Theilung betrachtet werden kann. In diesen Fällen steht dieselbe wahrscheinlich mit Stoffwechselprocessen im Kern in Zusammenhang. (Vergleiche hierüber auch Capitel VIII.)
Vermehrung der Kerne durch Abschnürung kommt endlich auch im Protistenreich vor. Sie findet sich häufig in der Gruppe der Acineten, in welcher uns Podophrya gemmipara (Fig. 104) ein lehrreiches Beispiel liefert, das auf Seite 184 genauer beschrieben ist.
3) Endogene Kernvermehrung oder Vielkernbildung.
Eine dritte, sehr abweichende Art der Kernvermehrung, welcher ich den für die Ueberschrift gewählten Namen geben möchte, ist von Richard Hertwig (VI. 36) bei einer Abtheilung der Radiolarien, den Thalassicollen, entdeckt, später von Carl Brandt (VI. 8) bestätigt und in ihren Einzelheiten noch genauer verfolgt worden.
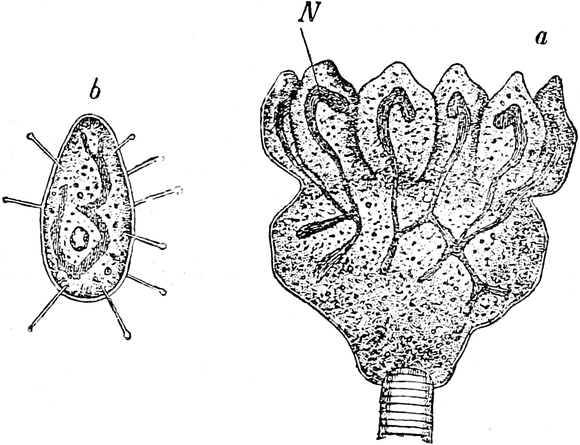
Fig. 104.
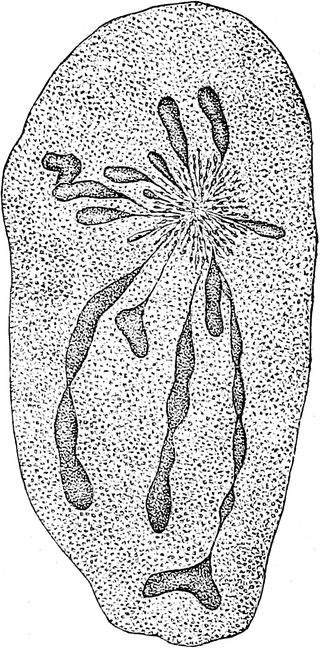
Fig. 105.
Fig. 104. Zellknospung. Podophrya gemmipara mit Knospen. R. HERTWIG, Zoologie Fig. 21.
a Knospen, die sich ablösen und zum Schwärmer b werden, N Kern.
Fig. 105. Ein kleines Stück von einem Durchschnitt durch den grossen, bläschenförmigen Kern, das sogenannte Binnenbläschen von Thalassicolla nucleata, mit strangförmigen, von einem gemeinsamen Punkt ausstrahlenden Binnenkörpern (Kernkörpern). R. HERTWIG Taf. V, Fig. 7.
Die Thalassicollen, diese grössten Radiolarienformen, deren Centralkapsel fast den Durchmesser eines Froscheies erreicht, besitzen während des grössten Theils ihres Lebens einen einzigen, riesigen, hochdifferenzirten Kern von etwa ½ mm Durchmesser mit einer dicken, porösen Kernmembran, das sogenannte Binnenbläschen. Dieses bietet viel Aehnlichkeit mit den multinucleolären Keimbläschen eines Fisch- oder Amphibieneies dar. In seinem Inhalt finden sich zahlreiche, meist im Centrum zu einem Haufen zusammengedrängte, verschieden geformte Nucleïnkörper vor (Fig. 105). Inmitten derselben liegt sehr häufig ein helles Centralkörperchen, eingehüllt von einer Strahlensphäre, welche R. Hertwig schon gesehen und abgebildet, und welche neuerdings Brandt genauer untersucht hat. Der letztere konnte verfolgen, wie zur Zeit der Fortpflanzung das Centralkörperchen, welches mir dem von der pflanzlichen und thierischen Zelle bekannten, gleichnamigen Gebilde zu entsprechen scheint, sich an die Oberfläche des Binnenbläschens begiebt, die Strahlensphäre hinter sich herziehend. Hier tritt es durch die Kernmembran in das umgebende Protoplasma der Centralkapsel aus, wo Brandt über sein weiteres Schicksal nichts berichtet.
Um diese Zeit treten dann auch zahlreiche, kleine Kerne im Protoplasma der Centralkapsel, das ursprünglich ganz kernfrei ist, ausserhalb des Binnenbläschens auf; sie dienen als Centren für die Bildung kernhaltiger Schwärmsporen, deren Zahl sich schliesslich auf Hunderttausende beläuft. Währenddem beginnt das Binnenbläschen zu schrumpfen und was es an Kernkörperchen besass, in demselben Maasse zu verlieren, als ausserhalb desselben der Kernreichthum im Protoplasma zunimmt; schliesslich wird es ganz aufgelöst. Hierbei stellt Brandt in der Kernvermehrung Verschiedenheiten auf, je nachdem sich Isosporen oder Anisosporen bilden.
Aus dem ganzen Vorgang ziehen R. Hertwig und Brandt den gewiss richtigen Schluss, dass die zur Schwärmerbildung dienenden und in der Centralkapsel erst spärlich, dann immer reichlicher auftretenden Kerne von Substanztheilen des Binnenbläschens (den Kernkörperchen) abstammen. „Mit dieser Deutung,“ bemerkt R. Hertwig, „habe ich einen Modus der Kernvermehrung angenommen, welcher sich wesentlich von dem bekannten unterscheidet und durch keine Beobachtungen der thierischen und pflanzlichen Histologie bis jetzt bewiesen ist. Denn wenn wir den Vorgang histologisch zu deuten versuchen, so würden wir zu dem Resultate gelangen, dass Kerne sich nicht allein durch Theilung oder Knospung vermehren können, sondern dass sie auch entstehen, indem die Kernkörper eines Kerns sich durch Theilung vervielfältigen, auswandern und im Protoplasma der zugehörigen Zelle zu selbständigen Kernen werden.“ „Eine derartige multinucleoläre Zelle könnten wir dann ebenso für potentia vielkernig halten, wie eine vielkernige Zelle für potentia vielzellig, und würde so der allmähliche Uebergang, welcher zwischen dem einzelnen Zellindividuum und dem aus Theilung desselben entstandenen Zellhaufen besteht, ein noch mehr durch Zwischenstadien vermittelter sein, als er ohnedies schon ist.“
Bei dieser Gelegenheit sei auch erinnert an die eigenthümlichen Erscheinungen der Kernvermehrung, welche von Fol (VI. 20), Sabatier, Davidoff (VI. 87) u. A. an unreifen, noch ziemlich jungen Eiern von Ascidien beobachtet und mit der Entstehung der Follikelzellen in Beziehung gebracht sind. Vergleiche auch die von Schäfer (VI. 65a) beobachteten, ähnlichen Vorgänge im jungen Säugethierei.
III. Verschiedene Arten der Zellvermehrung.
1) Allgemeine Regeln.
Abgesehen von den im letzten Abschnitt besprochenen Processen der Kernsegmentirung, der Kernzerschnürung und endogenen Kernbildung kann die Zellvermehrung noch ein sehr verschiedenartiges Aussehen gewinnen, je nach der Art und Weise, wie sich der Protoplasmakörper bei der Theilung verhält. Ehe wir uns mit den hierdurch bedingten Hauptarten und Unterarten der Zellvermehrung bekannt machen, wird es zuvor nothwendig sein, auf einige allgemeine Beziehungen zwischen Kern und Protoplasma einzugehen, auf welche ich in meiner Schrift „Welchen Einfluss übt die Schwerkraft auf die Theilung der Zellen“ (VI. 31) die Aufmerksamkeit gelenkt habe.
In der ruhenden Zelle kann der Kern bald diese, bald jene Lage einnehmen, auch seinen Ort verändern, wie er denn zum Beispiel in Pflanzenzellen durch die Protoplasmaströmung hierin und dahin mitgenommen wird. Unter besonderen Verhältnissen aber, von denen hier nur die zur Zelltheilung in Beziehung stehenden erörtert werden sollen, während andere uns in Capitel VIII beschäftigen werden, tritt der Kern zum Protoplasmakörper in ganz bestimmte, gesetzmässige Lagebeziehungen.
Zwischen Protoplasma und Kern finden während der Theilung Wechselwirkungen statt, um mich eines Gleichnisses zu bedienen, wie zwischen Eisentheilchen und einem beweglich aufgehängten Magneten. Durch die magnetische Kraft werden die Eisentheilchen polarisirt und dadurch veranlasst, sich in Radien um die Pole herum zu gruppiren. Auf der anderen Seite aber übt die Massenvertheilung des Eisens auf die Stellung des Magneten auch wieder einen richtenden Einfluss aus. In der Zelle erhalten die Wechselwirkungen zwischen Protoplasma und Kern ihren sinnenfälligen Ausdruck in der Entstehung der Polcentren und der früher beschriebenen Strahlenfiguren. Die Folge dieser Wechselwirkungen aber ist, dass der Kern stets die Mitte seiner Wirkungssphäre einzunehmen sucht.
Um diesen Satz zu beweisen, giebt es wohl keine geeigneteren Objecte als die thierischen Eizellen, die uns ja in ihrer Grösse, Form und inneren Organisation sehr zahlreiche, interessante Verschiedenheiten darbieten.
Bei den meist kleinen Eiern, in denen Protoplasma und Dotterbestandtheile mehr oder weniger gleichmässig vertheilt sind, nimmt der Eikern vor der Befruchtung (Fig. 106 A) keine fest bestimmte Lage ein. Wenn er dagegen nach der Befruchtung als Theilkern in Thätigkeit zu treten beginnt (Fig. 106 B), stellt er sich genau in den geometrischen Mittelpunkt ein, also, wenn das Ei eine Kugel darstellt, in das Centrum derselben, wenn es dagegen eine ovale Form hat (Fig. 110), in die Mitte der die beiden Pole verbindenden Längsaxe. Von einer Strahlensphäre umgeben, sieht man den Kern durch das Protoplasma nach dem im Voraus zu bestimmenden Ort hinwandern.
Abweichungen von der Normalstellung treten ein, wenn Protoplasma und Dotterbestandtheile, von denen die letztern meist ein grösseres specifisches Gewicht, als das erstere besitzen, ungleichmässig im Eiraum vertheilt sind. Sehr häufig nehmen dann die Eier eine polare Differenzirung an, die theils eine directe Folge der Schwerkraft ist, unter deren Einfluss sich eine Sonderung der verschiedenen Substanzen nach ihrer Schwere vollzieht, theils aber auch durch andere Vorgänge wie durch die Reife- und Befruchtungserscheinungen hervorgerufen wird.
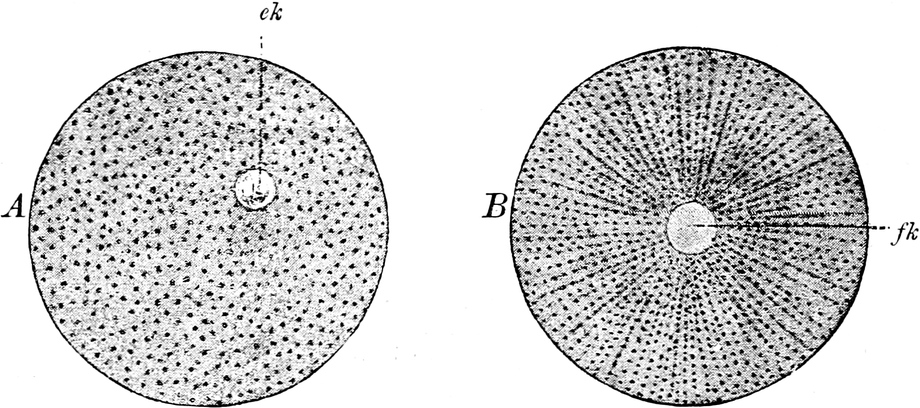
Fig. 106.
A
Reifes Ei eines Echinoderms.
Dasselbe schliesst im Dotter den sehr kleinen Eikern (
ek
) ein. O. H
ERTWIG
, Entwicklungsgesch. Fig. 14.
B
Ei eines Seeigels gleich nach beendeter Befruchtung.
fk
Ei- und Samenkern sind zum Theilkern verschmolzen, der im Centrum einer Protoplasmastrahlung liegt. O. H
ERTWIG
, Entwicklungsgesch. Fig. 20.
Die polare Differenzirung besteht darin (Fig. 107 u. 108), dass sich nach dem einen Pol zu das leichtere Protoplasma, nach dem anderen Pol dagegen das schwerere Dottermaterial ansammelt. Die Sonderung kann bald weniger, bald schärfer durchgeführt sein. Bei den Eiern der Amphibien z. B. ist sie an Durchschnitten durch ein Ei sehr wenig auffällig, indem nur in der einen Hälfte die Dotterplättchen etwas kleiner und durch mehr Protoplasma voneinander getrennt sind, in der anderen Hälfte aber grösser werden und dichter zusammenliegen.
Fig. 107.
Fig. 108.
Fig. 107. Schema eines Eies mit polständigem Nahrungsdotter. O. HERTWIG, Entwicklungsgesch. Fig. 3.
Der Bildungsdotter bildet am animalen Pole A.P eine Keimscheibe k.sch, in welcher das Keimbläschen k.b eingeschlossen ist. Der Nahrungsdotter n.d füllt den übrigen Eiraum nach dem vegetativen Pol (V.P) zu aus.
Fig. 108. Eizelle (Eidotter) des Huhns aus dem Eierstock. O. HERTWIG, Entwicklungsgesch. Fig. 6a.
k.sch Keimscheibe, k.b Keimbläschen, w.d weisser Dotter, g.d gelber Dotter, d.h Dotterhaut.
In anderen Fällen hat sich vom dotterhaltigen Theil des Eies eine kleine Menge von mehr oder minder dotterfreiem Protoplasma abgesondert und wie bei den Reptilien und Vögeln (Fig. 108 k.sch) die Form einer Scheibe angenommen.
Die beiden Pole des Eies unterscheidet man voneinander als den animalen und den vegetativen; an jenem ist mehr Protoplasma, an diesem mehr Dottermaterial angesammelt, jener hat daher ein geringeres, dieser ein grösseres specifisches Gewicht. In Folge dessen müssen polar differenzirte Eier stets ein und dieselbe Gleichgewichtslage einzunehmen suchen. Während bei kleinen Eiern mit gleichmässig vertheiltem Material der Schwerpunkt mit dem Mittelpunkt der Kugel zusammenfällt und ihre Lage daher eine wechselnde sein kann, ist bei polar differenzirten Eiern der Schwerpunkt excentrisch geworden und zwar hat er sich mehr oder minder weit nach dem vegetativen Pole zu verschoben. Es wird daher stets eine solche Orientirung im Raume eintreten, dass der vegetative Pol nach abwärts, der animale nach oben gekehrt ist. Eine Linie, welche die beiden Pole verbindet und als Eiaxe bezeichnet wird, muss sich, wenn keine Hindernisse der freien Bewegung der Eikugel entgegentreten, stets lothrecht einzustellen suchen.
Lehrreiche Beispiele hierfür bieten das Froschei und das Hühnerei. Am Froschei (Fig. 115) sind die ungleichen Hälften schon äusserlich leicht dadurch kenntlich gemacht, dass die animale Hälfte dunkelschwarz pigmentirt ist, die vegetative weissgelb aussieht. Wird ein solches Ei nach der Befruchtung in das Wasser gebracht, so nimmt es in wenigen Secunden eine feste Ruhelage ein, indem sich stets die schwarze Seite nach oben, die helle Seite, weil sie specifisch schwerer ist, nach abwärts kehrt.
Ebenso mag man das Hühnerei (Fig. 108) drehen, wie man will, stets wird man die Keimscheibe (k.sch) den höchsten Punkt der Dotterkugel einnehmen sehen, weil letztere bei jeder Bewegung in ihrer Eiweisshülle mit rotirt und sich mit dem vegetativen Pol nach abwärts einstellt.
Polare Differenzirung kommt ebenso wie bei kugligen, auch bei ovalen Eiern vor. Als Beispiel diene uns das Ei eines Wurmes Fabricia (Fig. 109). Hier ist am einen Ende des ovalen Körpers mehr Protoplasma, am entgegengesetzten mehr Dottermaterial angehäuft.
Fig. 109. Ei von Fabricia.
Nach H
AECKEL
.
A
animaler Theil.
V
vegetativer Theil.
Bei polar differenzirten Eiern wird man nun den befruchteten Kern vergebens an den Stellen, wo er bei dotterarmen Eiern liegen würde, suchen. Nur einer oberflächlichen Betrachtung wird dies als eine Ausnahme von dem oben aufgestellten Gesetz erscheinen; bei tieferem Nachdenken dagegen bilden solche Fälle eher eine Bestätigung des Satzes, dass der Kern stets die Mitte seiner Wirkungssphäre einzunehmen sucht. Wechselwirkungen finden zwischen dem Kern und dem Protoplasma, nicht aber zwischen ihm und dem Dottermaterial statt, welches bei allen Theilungsprocessen sich wie eine passive Masse verhält. Ungleichmässigkeiten in der Protoplasmavertheilung müssen sich daher auch auf Grund des obigen Satzes in der Lage des Kerns geltend machen, und zwar muss derselbe nach den Orten der grösseren Protoplasmaansammlung hinrücken, sich also gerade in entgegengesetzter Richtung wie der Schwerpunkt bewegen. Je mehr der letztere nach dem vegetativen Pole, um so mehr wird der Theilkern nach dem animalen Pole zu liegen kommen.
Und so lehrt es uns auch die Untersuchung in der That. Im Froschei (Fig. 115) findet sich der Theilkern etwas oberhalb der Aequatorialebene der Kugel in ihrer animalen Hälfte; in den Eiern, an denen sich das Protoplasma als Keimscheibe noch schärfer vom Dotter gesondert hat (Fig. 108), ist der Theilkern in nächste Nähe des animalen Poles emporgestiegen und in die Keimscheibe selbst aufgenommen worden (Reptilien, Vögel, Fische etc.). Ebenso ist im Ei von Fabricia (Fig. 109) der Theilkern nach der protoplasmareicheren Hälfte des ovalen Körpers verschoben.
Noch mehr tritt die Wechselwirkung zwischen Protoplasma und Kern, durch welche die Lage des letzteren bedingt wird, während der Theilung selbst hervor, von dem Moment an, wo sich die beiden Pole bilden. Es lässt sich hier das zweite allgemeine Gesetz aufstellen, dass die beiden Pole der Theilungsfigur in die Richtung der grössten Protoplasmamassen zu liegen kommen, etwa in derselben Weise, wie die Lage der Pole eines Magneten durch Eisentheile in seiner Umgebung beeinflusst wird.
Nach dem zweiten Gesetz kann z. B. in einem kugligen Ei, in welchem Protoplasma und Dotter gleichmässig vertheilt sind, die Axe der central gelegenen Kernspindel mit der Richtung eines beliebigen Radius, dagegen in einem ovalen Protoplasmakörper nur mit dem längsten Durchmesser desselben zusammenfallen. In einer kreisrunden Protoplasmascheibe stellt sich die Spindelaxe parallel zur Oberfläche in einen beliebigen Durchmesser, in einer ovalen Scheibe dagegen wieder nur in den längsten Durchmesser ein.
Mit diesen Regeln stimmen die Erscheinungen, wie sie bei der Zelltheilung und insbesondere bei der Eifurchung beobachtet werden, fast ausnahmslos überein. Namentlich aber sprechen für die Gültigkeit des an zweiter Stelle aufgestellten Gesetzes zwei Thatsachen: eine Beobachtung von Auerbach an den Eiern von Ascaris nigrovenosa und Strongylus auricularis (VI. 2) und ein Experiment von Pflüger.
Die Eier der beiden von Auerbach untersuchten Nematoden (Fig. 110) haben eine ovale Gestalt, so dass 2 Pole an ihnen zu unterscheiden sind, welche bei der Befruchtung eine verschiedene Rolle spielen. An dem einen Pole nämlich, welcher der Keimstätte des Eischlauches zugewendet ist, bilden sich die Polzellen und entsteht der Eikern, an dem anderen, nach dem Uterusausgang zu gelegenen Pol dagegen findet die Befruchtung und das Eindringen eines Samenkörpers statt; hier erscheint der Samenkern (siehe Capitel VII).
Beide Kerne wandern dann unter gleichmässiger Grössenzunahme und in gerader Richtung, welche mit der Eiaxe zusammenfällt, aufeinander zu, treffen sich in der Mitte der letzteren, nachdem sie zu zwei ansehnlichen Bläschen angewachsen sind, legen sich fest zusammen und platten sich an den Berührungsflächen ab (Fig. 110 A).
Bei der Copulation der Geschlechtskerne pflegt nun in ihre Berührungsfläche oder die Copulationsebene die Axe der sich ausbildenden Spindel, an deren Enden die Polkörperchen liegen, zu fallen. Würde dies auch hier erfolgen, so würde die Spindelaxe entgegen der oben aufgestellten Regel die Längsaxe des Eies unter rechtem Winkel schneiden, es würden die Polkörperchen in der Richtung der kleinsten Protoplasmamengen eingestellt sein und es müsste schliesslich die erste Theilungsebene das Ei seiner Länge nach halbiren.
Ein derartiger, der Regel zuwiderlaufender Fall tritt nun aber hier nicht ein, weil Protoplasma und Kern, indem sie aufeinander einwirken, ihr Lageverhältniss zu einander, den gegebenen Bedingungen entsprechend, nachträglich reguliren. Die durch den Befruchtungsverlauf bedingte Ausgangsstellung des copulirten Kernpaares, welche eine für die Theilung durchaus unzweckmässige ist, ändert sich, sowie sich die zwei Pole schärfer ausbilden. Das Kernpaar fängt an, sich um einen rechten Winkel zu drehen (Fig. 110 B) und zwar solange und der Art, dass die Copulationsebene mit der Längsaxe des Eies zusammenfällt (Fig. 110 C).
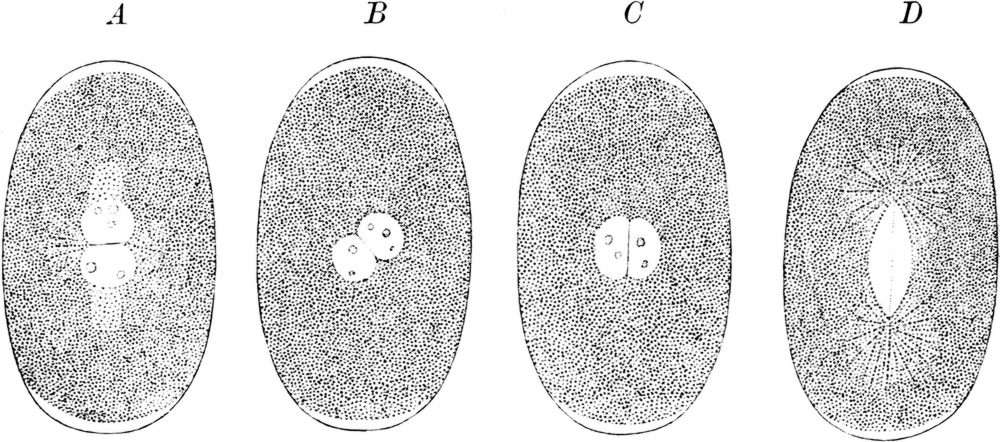
Fig. 110. Eier von Ascaris nigrovenosa in stark comprimirtem Zustand auf vier verschiedenen Stadien der Befruchtung.
Nach A
UERBACH
Taf. IV, Fig. 8–11.
„Die Richtung in welcher die Drehung unter dem Mikroskope erfolgt, geschieht bald im Sinne eines Uhrzeigers, bald im entgegengesetzten.“ (Auerbach.)
In Folge des interessanten Rotationsphänomens kommen wieder, wie es die Regel verlangt, die beiden Pole der Theilungsfigur in die Richtung der grössten Protoplasmaansammlungen zu liegen, während sich die geringste Menge in der Gegend der späteren Theilungsebene befindet (Fig. 110 D).
Ein zweiter Beweis für die Gültigkeit unseres Gesetzes sind die Experimente, welche Pflüger (VI. 49, 50) am Froschei angestellt hat. Derselbe presste ein frischbefruchtetes Froschei zwischen zwei verticale, parallele Glasplatten vorsichtig ein und gab ihm dadurch ungefähr die Gestalt „eines stark abgeplatteten Ellipsoids, dessen längste Axe horizontal, dessen mittellange vertical und dessen kürzeste wieder horizontal und senkrecht auf der längsten ist.“ In fast allen Fällen stand nun die erste Theilebene senkrecht auf der Oberfläche der komprimirenden Platten und war zugleich eine lothrechte. Die Kernspindel muss sich daher auch hier unserer Regel gemäss in der Richtung des längsten Durchmessers des Ellipsoides eingestellt haben.
Aus dem Gesetz, dass die Lage der Kernaxe bei der Theilung von der Differenzirung und Form des umhüllenden Protoplasmakörpers bestimmt wird der Art, dass sich die Pole in der Richtung der grössten Protoplasmaansammlungen einstellen, ergiebt sich uns weiter noch die causale Begründung für ein drittes Gesetz, welches Sachs (VI. 64) beim Studium der Pflanzenanatomie erhalten und als das Princip der rechtwinkligen Schneidung der Theilungsflächen bei der Zweitheilung bezeichnet hat. Denn wenn wir die Ursachen wissen, durch welche die Lage der Spindelaxen bedingt wird, dann können wir unter allen Umständen auch im Voraus bestimmen, wie die Theilungsebenen zu liegen kommen, da diese die Spindelaxen unter rechtem Winkel schneiden müssen.
Im Grossen und Ganzen wird nun bei jeder Theilung einer Mutterzelle, wenn dieselbe nicht in einer Richtung ausserordentlich in die Länge gestreckt ist, der Fall eintreten, dass in den Tochterzellen die Axe, welche in der Richtung der früheren Hauptaxe der Mutterzelle liegt, die kürzeste geworden ist. Die Axe der zweiten Theilspindel wird sich daher in diesem Falle nie in der Richtung der vorausgegangenen Theilspindel, vielmehr rechtwinklig zu dieser Richtung, der Form des Protoplasmakörpers entsprechend, einstellen müssen. Daher wird die zweite Theilebene die erste rechtwinklig schneiden müssen.
Im Allgemeinen werden die aufeinander folgenden Theilflächen einer Mutterzelle, die in 2, 4, 8 und mehr Tochterzellen durch successive Zweitheilungen zerlegt wird, in den drei Richtungen des Raumes alternirend erfolgen und dabei mehr oder weniger genau senkrecht auf einander stehen.
Bei pflanzlichen Geweben ist dies oft sehr schön zu erkennen, weil sich hier rasch ein festes Zellhautgerüst den Theilungsebenen der Zellen entsprechend ausbildet und so dieselben gewissermaassen dauernd fixirt. Bei thierischen Zellen ist es viel weniger der Fall, weil ihre Form beim Fehlen einer festen Membran sich zwischen den Theilungen häufig verändert; auch die Lage der Zellen zu einander ist dem Wechsel unterworfen. Es treten „Brechungen und Verschiebungen“ der ursprünglichen Theilstücke einer Mutterzelle ein, wofür das Studium der Furchungserscheinungen einer jeden Eizelle Beispiele liefert, über welche auf Seite 181 gehandelt wird.
In der Botanik werden die in den drei Richtungen des Raumes sich schneidenden Wandrichtungen als tangentiale oder perikline, als transversale oder antikline und als radiale bezeichnet (Fig. 111 u. 112). Perikline oder tangentiale Wandrichtungen sind in gleichem Sinne, wie die Oberfläche der Organe orientirt. Antikline oder transversale Wände schneiden die periklinen und zugleich die Wachsthumsaxe des Organs unter rechtem Winkel. Radiale Wände endlich sind solche, welche ebenfalls rechtwinklig zu den periklinen gestellt sind, aber die Wachsthumsaxe des Organs in sich aufnehmen.
Um dieses Verhältniss an einem Beispiel klar zu machen, wählen wir gleich ein etwas schwierigeres Objekt, den Vegetationspunkt eines Sprosses. Für denselben weist Sachs die Gültigkeit seines Princips in folgenden Sätzen nach, welche seinen Vorlesungen über Pflanzenphysiologie (II. 33) entnommen sind:
„Die Vegetationspunkte der Wurzeln und Sprosse zeigen auf richtig geführten Längs- und Querschnitten charakteristische Zellwandnetze oder Zellenanordnungen, die überall auch bei den verschiedensten Pflanzenarten typisch übereinstimmen, was im Wesentlichen darauf beruht, dass auch die embryonale Substanz der Vegetationspunkte, indem sie überall durch Einlagerung an Volumen zunimmt, durch Zellwände gekammert und gefächert wird, welche einander rechtwinklig schneiden. Der Längsschnitt eines Vegetationspunktes lässt jederzeit ein System von Periklinen erkennen, welches durch Antiklinen, die ihrerseits die orthogonalen Trajectorien jener darstellen, geschnitten wird. Haben wir es dabei mit Vegetationspunkten flächenförmiger Gebilde zu thun, so sind auch nur diese beiden Systeme von Zellwänden vorhanden; ist dagegen der Vegetationspunkt halbkuglig oder kegelförmig oder sonst ähnlich gestaltet, also nicht blos flächenförmig, sondern körperlich gebildet, so ist noch ein drittes System von Zellwänden vorhanden, nämlich Längswände, welche von der Längsaxe des Vegetationspunktes aus radial nach Aussen verlaufen“.
Fig. 111. Construction des Zellnetzes an einem Vegetationspunkt.
Nach S
ACHS
Fig. 284.
„Es wird jedoch zur Erleichterung des Verständnisses beitragen, wenn wir auch hier wieder unsere weiteren Betrachtungen an ein nach bestimmten Grundsätzen, aber willkürlich construirtes Schema anknüpfen und zunächst für dasselbe nur die Flächenansicht eines Längsschnittes durch einen Vegetationspunkt (Fig. 111) zu Grunde legen. Halten wir uns hierbei an unsere Figur, deren Umriss E E dem Längsschnitt eines kegelförmigen Vegetationspunktes entspricht, und setzen wir voraus, dass dieser Umriss, wie es auch häufig in der Natur nahezu eintrifft, die Form einer Parabel habe und dass die Fächerung des Raumes, den die embryonale Substanz des Vegetationspunktes erfüllt, wieder in der Art stattfinde, dass anti- und perikline Wände einander rechtwinklig schneiden. Unter dieser Voraussetzung kann man nun nach einem bekannten Lehrsatz der Geometrie das Zellnetz in unserer Figur construiren: vorausgesetzt, dass x x die Axe und y y die Richtung des Parameters ist, sind alle die mit P p bezeichneten Periklinen eine Schaar von confocalen Parabeln. Ebenso sind alle Antiklinen A a eine Schaar confocaler Parabeln, welche Brennpunkt und Axe mit den vorigen gemeinschaftlich haben, aber in der entgegengesetzten Richtung verlaufen. Zwei solche Systeme confocaler Parabeln schneiden einander überall rechtwinklig.“
„Sehen wir nun nach, ob ein medianer Längsschnitt durch einen vorgewölbten, ungefähr parabolisch geformten Vegetationspunkt ein Zellnetz darbietet, welches in den wesentlichen Eigenschaften mit unserm geometrisch konstruirten Schema übereinstimmt, da finden wir z. B. am Vegetationspunkt der Edeltanne (Fig. 112) sofort die entsprechende innere Structur, wenn man nur beachtet, dass in unserer Figur die beiden Vorwölbungen b b das Bild einigermaassen stören; es sind junge Blattanlagen, welche aus dem Vegetationspunkt hervorsprossen. Im Uebrigen erkennt man sofort die beiden Systeme von Anti- und Periklinen, deren Krümmungen kaum einen Zweifel darüber lassen, dass sie einander, wie in unserm obigen Schema, rechtwinklig schneiden oder die Antiklinen die orthogonalen Trajectorien der Periklinen sind. So wie in unserm Schema umlaufen auch nur einige wenige Periklinen unter dem Scheitel S den gemeinschaftlichen Brennpunkt aller Parabeln, die andern reichen, von unten herkommend, nur bis in die Nähe des Brennpunktes, d. h. mit andern Worten: die entsprechenden Zelltheilungen finden immer erst dann statt, wenn die Periklinen unterhalb des Krümmungscentrums sich weit genug voneinander entfernt haben, so dass neue Periklinen zwischen ihnen eingeschaltet werden müssen, und ganz dasselbe gilt von den Antiklinen A a. Man bemerkt leicht an unserm Schema (Fig. 111), dass um den gemeinschaftlichen Brennpunkt aller Anti- und Periklinen herum die Krümmungen der Constructionslinien besonders kräftig sind.“
Fig. 112. Längsschnitt durch den Vegetationspunkt einer Winterknospe der Edeltanne (Abies pectinata).
Ungefähr 200mal vergrössert. Nach S
ACHS
Fig. 285.
S
Scheitel des Vegetationspunktes,
b
b
jüngste Blätter,
r
r
Rinde,
m
m
Mark.
„Viele hunderte von medianen Längsschnitten durch Vegetationspunkte von Sprossen und Wurzeln, welche die verschiedensten Beobachter gezeichnet haben, ohne auch nur im Entferntesten das zu Grunde liegende Princip zu kennen, entsprechen der von mir gegebenen Construction und beweisen die Richtigkeit ihres Princips.“ —
Um endlich einige Abweichungen von der normalen Zelltheilung zu verstehen, ist noch ein viertes Gesetz zu beachten, welches von Balfour (VI. 3) genauer formulirt ist und welches lautet: Die Schnelligkeit, mit welcher sich eine Zelle theilt, ist proportional der Concentration des in ihr befindlichen Protoplasmas. Protoplasmareiche Zellen theilen sich rascher als protoplasmaärmere aber dotterreichere. Der Satz erklärt sich daraus, dass beim Theilprocess allein das Protoplasma die active, das in ihm eingelagerte Dottermaterial die passive Substanz ist, welche durch die active mit bewältigt werden muss. Die Arbeit für das Protoplasma bei der Theilung ist um so grösser, je mehr Dotter vorhanden ist, und sie kann in vielen Fällen sogar eine so grosse werden, dass sie nicht mehr zu Ende geführt werden kann. Letzteres tritt häufig bei polar differenzirten Eiern ein, wenn bei ihnen sich der Haupttheil des Protoplasmas am animalen Pol concentrirt hat. Dann bleibt die Theilung auf diesen Abschnitt der Zelle beschränkt, während die vegetative Hälfte nicht mehr in Zellen zerlegt wird. Aus der totalen ist so eine unvollständige oder partielle Theilung hervorgegangen. Beide extremen Formen sind in der Natur durch Uebergänge untereinander verbunden.
2) Uebersicht der Arten der Zelltheilung.
Ueberblicken wir nun die verschiedenen Arten der Zelltheilung, so lassen sich dieselben in folgendes Schema bringen, welches ich der Einzelbesprechung zu Grunde lege:
Typus. Die totale Theilung. äquale. inäquale. Knospung.
Die partielle Theilung.
Die Vielzellbildung.
Die Reductionstheilung.
Die lehrreichsten Beispiele für die verschiedenen Theilungsarten bieten hauptsächlich die thierischen Eizellen, weil bei ihnen die Theilungen sich rasch aufeinander folgen und so am klarsten die gesetzmässigen Beziehungen zu einander erkennen lassen.
Ia. Die äquale Theilung.
Bei der äqualen Theilung zerfällt das Ei, wenn es wie gewöhnlich die Form einer Kugel besitzt, zuerst in zwei Halbkugeln; bei der darauf folgenden zweiten Theilung muss sich die Kernspindel nach der oben auseinander gesetzten Regel parallel zur Grundfläche der Halbkugel einstellen, so dass diese sich jetzt in zwei Quadranten theilt. Hierauf muss die Spindelachse mit der Längsachse jedes Quadranten zusammenfallen, wodurch eine Zerlegung in je zwei Octanten herbeigeführt wird. In Folge dessen ist während des zweiten und dritten Furchungsstadiums die Lage, welche die zweite und dritte Furchungsebene zu einander und zur ersten Theilebene einhalten, eine streng gesetzmässige. Es halbirt nämlich stets die zweite Furchungsebene die erste und schneidet sie rechtwinklig, die dritte Ebene aber steht wieder senkrecht auf den beiden ersten und geht durch die Mitte der Axe hindurch, in welcher sich diese schneiden. Wenn man nun die Enden dieser Axe als Pole des Eies betrachtet, so kann man die beiden ersten Theilungsebenen als meridionale, die dritte als eine äquatoriale bezeichnen.
Schon nach der zweiten Furchung lassen sich in vielen Fällen Verschiebungen der vier Theilstücke aneinander beobachten, welche zur Folge haben, dass die von der zweiten Theilung herrührenden Furchen sich nicht mehr an den Polen in einem Punkte schneiden, sondern in geringer Entfernung vom Pol auf die erst gebildete Meridionalfurche treffen (Fig. 113). Es entsteht so eine bald kürzere, bald längere Querlinie, welche als Brechungslinie bezeichnet wird. Besonders schön ausgebildet habe ich (VI. 30b) eine solche bei den Eiern von Sagitta (Fig. 113) beobachtet:
Kurze Zeit nach Beendigung der zweiten Furchung des Sagitteneies haben sich die vier Zellen so angeordnet (Fig. 113), dass nur zwei von ihnen sich am animalen Pol in einer kurzen queren Furche, der animalen Brechungslinie, treffen; an die beiden Enden derselben stossen die beiden anderen Zellen, welche von der Berührung mit dem Pole ausgeschlossen sind, mit zugespitzten Enden an. Ganz dieselben Verhältnisse wiederholen sich am vegetativen Pol; nur treffen sich hier die beiden Zellen, welche den animalen Pol nicht erreichen, in einer vegetativen Brechungslinie, und diese ist dann stets so orientirt, dass sie die entgegengesetzte Brechungslinie, wenn wir beide auf dieselbe Ebene projiciren, unter rechtem Winkel kreuzt. Die durch Viertheilung entstandenen vier Zellen sind also keine regelmässigen Viertel einer Kugel; an jeder können wir ein stumpfes und ein spitzes, den Polen des Eies zugewandtes Ende unterscheiden. Je zwei aus einer Halbkugel abstammende Zellen sind dann in der Weise gruppirt, dass sie mit ihren stumpfen oder spitzen Enden nach entgegengesetzten Richtungen schauen.
Eine ähnliche Anordnung der vier ersten Furchungszellen ist an andern Objecten, so von Rabl an den Eiern von Planorbis, von Rauber (VI. 56) an Froscheiern beschrieben und von letzterem ausführlicher erörtert worden.
Auch bei ovalgeformten Eiern, bei denen die erste Theilungsebene nach unserem Gesetz quer zur Längsaxe orientirt ist, finden während der zweiten Furchung, die auf die erste senkrecht erfolgt, bedeutende Verschiebungen statt und kommen dadurch wieder deutlich ausgeprägte Brechungslinien zu Stande, wie die Figur 114 von Ascaris nigrovenosa ohne weitere Erklärung lehrt.
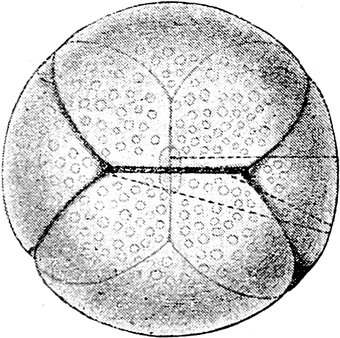
Fig. 113.
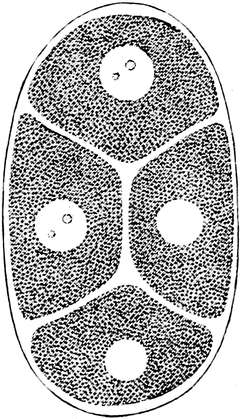
Fig. 114.
Fig. 113. Viergetheiltes Ei von Sagitta vom animalen Pol aus gesehen. 160mal vergrössert. HERTWIG Taf. V, Fig. 5.
Fig. 114. Viergetheiltes Ei von Ascaris nigrovenosa. Nach AUERBACH Taf. IV, Fig. 19.
Ib. Die inäquale Theilung.
Von der äqualen lässt sich leicht die inäquale Theilung ableiten. Am häufigsten ist dieselbe dadurch bedingt, dass in der Zelle Protoplasma und Dottermaterialien in ungleicher Weise vertheilt sind. Als Beispiel diene das polar differenzirte Froschei. Bei diesem liegt, wie schon gezeigt wurde, der Kern in der nach oben gekehrten, animalen Hälfte der Kugel (Seite 174). Wenn er sich hier zur Theilung anschickt, kann sich seine Axe nicht mehr in jeden beliebigen Radius des Eies einstellen; in Folge der ungleichmässigen Vertheilung des Protoplasma im Eiraum steht er unter dem Einflusse des protoplasmareicheren, pigmentirten Theils des Eies, welcher wie eine Calotte dem mehr deutoplasmahaltigen Theil aufliegt und wegen seiner geringeren specifischen Schwere obenauf schwimmt und horizontal ausgebreitet ist (Fig. 115 A). In einer horizontalen Protoplasmascheibe aber kommt die Kernspindel horizontal zu liegen; mithin muss die Theilungsebene sich in verticaler Richtung bilden. Zuerst beginnt sich eine kleine Furche am animalen Pole zu zeigen, weil derselbe mehr unter dem Einfluss der ihm genäherten Kernspindel steht und mehr Protoplasma enthält, von welchem die Bewegungserscheinungen bei der Theilung ausgehen. Die Furche vertieft sich langsam nach abwärts und schneidet nach dem vegetativen Pole zu durch.
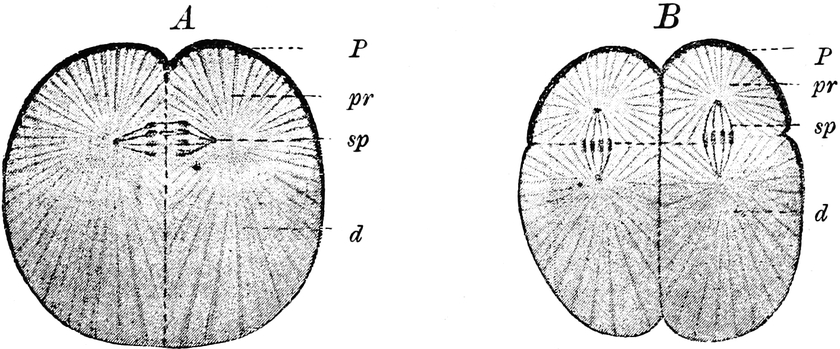
Fig. 115. Schema der Theilung des Froscheies.
O. H
ERTWIG
, Entwicklungsgesch. Fig. 31.
A
Erstes Theilungsstadium.
B
Drittes Theilungsstadium. Die vier Theilstücke des zweiten Theilungsstadiums beginnen durch eine Aequatorialfurche in acht Stücke zu zerfallen.
P
Pigmentirte Oberfläche des Eies am animalen Pol,
pr
protoplasmareicher,
d
deutoplasmareicher Theil des Eies;
sp
Kernspindel.
Die durch den ersten Theilungsakt entstandenen zwei Halbkugeln sind aus einem protoplasmareicheren, nach oben gerichteten und aus einem nach abwärts gekehrten, protoplasmaärmeren Quadranten zusammengesetzt. Dadurch wird erstens wieder die Lage und zweitens die Axe des Kerns, wenn er in die zweite Theilung eintritt, fest bestimmt. Den Kern haben wir nach dem früher aufgestellten Gesetz im protoplasmareicheren Quadranten aufzusuchen; die Axe der Spindel muss sich hier parallel zur Längsaxe des Quadranten einstellen, muss also horizontal zu liegen kommen. Die zweite Theilungsebene ist daher, wie die erste, lothrecht und schneidet dieselbe rechtwinklig.
Nach Ablauf der zweiten Furchung besteht das Amphibienei aus vier Quadranten, die durch verticale Theilungsebenen voneinander getrennt sind und zwei ungleichwerthige Pole besitzen, einen protoplasmareicheren, leichteren, nach oben gerichteten und einen dotterreicheren, schwereren, nach abwärts gekehrten. Beim äqual sich furchenden Ei sahen wir, dass auf dem dritten Theilungsstadium die Axen der Kernspindeln sich parallel zur Längsaxe der Quadranten einstellen. Das ist auch hier in einer etwas modificirten Weise der Fall (Fig. 115 B). Wegen des grösseren Protoplasmareichthums der oberen Hälfte jedes Quadranten kann die Spindel nicht wie bei dem äqual sich furchenden Ei in der Mitte desselben liegen, sondern muss dem animalen Pol des Eies mehr genähert sein. Ferner steht sie genau vertical, da die Quadranten des Amphibieneies wegen der ungleichen Schwere ihrer beiden Hälften im Raum fest orientirt sind. In Folge dessen muss jetzt die dritte Theilungsebene eine horizontale werden (Fig. 116 A), ferner muss sie oberhalb des Aequators der Eikugel mehr oder minder nach dem animalen Pole zu gelegen sein. Die Theilproducte sind von sehr ungleicher Grösse und Beschaffenheit und sind der Grund, warum man diese Form der Furchung als die inäquale bezeichnet hat. Die vier nach oben gelegenen Segmente sind kleiner und dotterärmer, die vier unteren viel grösser und dotterreicher. Nach den Polen, denen sie zugekehrt sind, werden sie auch als animale und als vegetative Zellen von einander unterschieden.
Fig. 116. Furchungsstadien von Petromyzon.
Aus H
ATSCHEK
Fig. 72.
A
und
B
nach S
HIPLEY
,
C
und
D
nach M. S
CHULTZE
.
Im weiteren Verlauf der Entwicklung (Fig. 116 B, C, D) wird der Unterschied zwischen den animalen und den vegetativen Zellen immer grösser, da die Zellen, je protoplasmareicher sie sind, um so rascher und häufiger sich theilen, wie gleichfalls schon oben hervorgehoben wurde.
Auch bei ovalen Eiern kann eine äquale Furchung vorkommen. So zerfällt bei Fabricia (Fig. 117) das Ei wegen der schon beschriebenen Ansammlung des Dotters an einem Pol (Fig. 109) in eine kleinere, protoplasmareichere und eine grössere dotterreichere Zelle, die sich im weiteren Verlauf verschieden rasch weiter furchen.
Fig. 117. Zweigetheiltes Ei von Fabricia.
Nach H
AECKEL
.
Ic. Knospung.
Von Knospung redet man, wenn das eine Theilproduct an Grösse hinter dem andern so sehr zurückbleibt, dass es nur als ein kleines Anhängsel an ihm erscheint und kaum zu einer Verminderung seiner Körpermasse führt. Das kleinere Theilproduct nennt man die Knospe, das andere die Mutterzelle. Bei dieser Vermehrungsweise giebt es zwei Unterarten, je nachdem eine oder mehrere Knospen an der Mutterzelle ihren Ursprung nehmen.
Im Thierreiche spielt der Knospungsprocess bei der Reife des Eies eine Rolle und führt zur Entstehung der Richtungskörper oder Polzellen. Hierunter versteht man zwei bis drei kleine Kügelchen, welche aus Protoplasma und Kernsubstanz zusammengesetzt sind, daher den Werth von kleinen Zellen besitzen und häufig innerhalb der Dotterhaut dem animalen Pol des Eies aufliegen. Der Hergang beim Knospungsprocess ist folgender:
Währenddem sich das Keimbläschen auflöst, entsteht aus Bestandteilen seines Inhaltes eine typische Kernspindel mit zwei Polstrahlungen an ihren Enden. Dieselbe verändert ihre Lage im Dotter (Fig. 118 I) und rückt allmählich nach dem animalen Pol empor, bis sie mit ihrer einen Spitze an der Oberfläche anstösst. Hier angelangt, stellt sie sich mit ihrer Längsaxe in die Richtung eines Eiradius ein. Bald beginnt die Knospung; an der Stelle, wo der eine Pol der Kernfigur die Oberfläche berührt, wölbt sich der Dotter zu einem kleinen Hügel empor, in welchen die Spindel selbst zur Hälfte hineinrückt (Fig. 118 II).
Fig. 118. Bildung der Polzellen bei Asterias glacialis.
O. H
ERTWIG
, Entwicklungsgesch. Fig. 13.
In Fig.
I
ist die Kernspindel (
sp
) an die Oberfläche des Eies gerückt. In Fig.
II
hat sich ein kleiner Hügel (
rk
1
) gebildet, der die Hälfte der Spindel aufnimmt. In Fig.
III
ist der Hügel zu einer Polzelle (
rk
1
) abgeschnürt. Aus der Hälfte der früheren Spindel ist wieder eine zweite vollständige Spindel (
sp
) entstanden. In Fig.
IV
wölbt sich unter der ersten Polzelle ein zweiter Hügel hervor, der sich in Fig.
V
zur zweiten Polzelle (
rk
2
) abgeschnürt hat. Aus dem Rest der Spindel entwickelt sich der Eikern (ek) in Fig.
VI
.
Der Hügel schnürt sich darauf an seiner Basis ein und löst sich mit der Hälfte der Spindel vom Dotter als eine sehr kleine Zelle ab (Fig. 118 III). Hierauf wiederholt sich genau derselbe Vorgang noch einmal (Fig. 118 IV–VI), nachdem sich die im Ei zurückgebliebene Hälfte der Spindel, ohne in das bläschenförmige Ruhestadium des Kerns zuvor eingetreten zu sein, wieder zu einer ganzen Spindel ergänzt hat. Auf die feineren Einzelheiten des Vorgangs, welche die Kernspindel betreffen, wird auf Seite 191 noch genauer eingegangen werden.