VIERTES CAPITEL. Die Lebenseigenschaften der Zelle. II. Die Reizerscheinungen.
Reading edition
Die wunderbarste Eigenschaft des Protoplasma ist seine Reizbarkeit oder Irritabilität[1]. Darunter versteht man, wie Sachs (IV. 32a) sich ausdrückt, „die nur den lebenden Organismen eigenthümliche Art, auf die verschiedensten Einwirkungen der Aussenwelt in dieser oder jener Weise zu reagiren.“ Durch die Irritabilität scheidet sich am meisten die belebte von der unbelebten Natur, und wurden in Folge dessen ältere Naturforscher veranlasst, in ihr den Ausdruck einer besonderen, nur der organischen Natur zukommenden Lebenskraft zu erblicken.
Die vitalistische Lehre (Vitalismus) hat die moderne Naturwissenschaft fallen gelassen; anstatt durch Annahme einer besonderen Lebenskraft, erklärt sie die Reizbarkeit als ein sehr zusammengesetztes, chemisch-physikalisches Phänomen. Dasselbe ist von anderen chemisch-physikalischen Phänomenen der unbelebten Natur nur graduell verschieden, nämlich nur dadurch, dass die äusseren Einwirkungen eine mit complicirterer Structur versehene Substanz, einen Organismus, ein hochzusammengesetztes, materielles System, treffen und dementsprechend in ihm auch eine Reihe complicirterer Vorgänge verursachen.
Bei dieser mechanischen Auffassung darf man aber nicht in einen häufig gemachten Fehler verfallen, aus Analogien, die manche Erscheinungen der unbelebten Natur mit Lebensvorgängen haben, die letzteren direct mechanisch erklären zu wollen. Hier ist immer im Auge zu behalten, dass eine Substanz von so verwickelter Structur wie die lebende Zelle in der unbelebten Natur auch nicht im Entferntesten ihres Gleichen hat, dass daher auch die Reactionen einer derartigen Substanz ein entsprechend complicirteres Gepräge an sich tragen.
Das Gebiet der Reizerscheinungen ist ein sehr umfangreiches, da es die gesammten Wechselbeziehungen umfasst, welche zwischen den Organismen und der Aussenwelt stattfinden. Unzählig sind die von Aussen auf uns einwirkenden Reize und Reizursachen. Der Uebersichtlichkeit halber wollen wir dieselben in 5 Gruppen besprechen. Eine Gruppe umfasst die thermischen Reize, eine zweite die Einwirkungen des Lichtes, eine dritte die Einwirkungen der Elektricität, eine vierte die mechanischen Reize und eine fünfte endlich das unerschöpfliche Gebiet der chemischen Reize.
Die Art und Weise, in welcher ein Organismus auf einen dieser Reize reagirt, bezeichnet man als die Reizwirkung. Dieselbe kann bei den einzelnen Organismen, auch wenn dieselben von genau dem gleichen Reiz betroffen werden, sehr ungleich ausfallen. Es hängt dies ganz von der Structur des Organismus oder von der feineren, für unsere Sinne allerdings nicht wahrnehmbaren Beschaffenheit der reizbaren Substanz ab. Die Organismen lassen sich in dieser Beziehung, um einen Vergleich von Sachs (IV. 32a) zu gebrauchen, verschiedenartig konstruirten Maschinen vergleichen, die durch dieselbe äussere Kraft der Wärme in Bewegung versetzt, doch je nach ihrer inneren Construction bald diesen, bald jenen Nutzeffect liefern. So antworten auch auf die gleiche Reizursache verschiedene Organismen oft in ganz entgegengesetzter Weise gemäss ihrer specifischen Structur.
Wir werden im Folgenden sehen, wie manche Protoplasmakörper durch Licht gewissermaassen angezogen, andere abgestossen werden, und wie sich dasselbe Schauspiel bei dem Studium der Wirkung chemischer Substanzen etc. wiederholt. Man spricht dann von einem positiven und negativen Heliotropismus, einem positiven und negativen Chemotropismus, Galvanotropismus, Geotropismus etc.
Aus der besonderen Structur der reizbaren Substanz erklärt sich auch noch eine Erscheinung, welche man in der Physiologie mit dem Namen der specifischen Energie belegt hat und welche in mancher Hinsicht das Gegenstück zu den oben besprochenen Erscheinungen darstellt. Wie dort auf den gleichen Reiz verschieden gebaute Protoplasmakörper in ungleicher Weise reagiren, so sehen wir auf der andern Seite, wie sehr verschiedene Reize, Licht, Elektricität, mechanische Berührung bei demselben Protoplasmakörper eine gleichartige Reizwirkung hervorrufen.
Eine Muskelzelle antwortet auf jede Art von Reiz durch Zusammenziehung, eine Drüsenzelle durch Secretion; ein Sehnerv kann nur Licht empfinden, mag er durch Lichtwellen, durch Elektricität oder Druck gereizt werden etc. In ähnlicher Weise sind auch die Pflanzenzellen, wie Sachs gezeigt hat, mit ihren specifischen Energien ausgerüstet. Ranken und Wurzeln krümmen sich in der ihnen eigenen Weise, gleichgültig, ob sie durch Licht, durch Schwerkraft, durch Druck oder elektrischen Strom gereizt werden. Die Reizwirkung erhält überall ihr specifisches Gepräge durch die besondere Structur der reizbaren Substanz, oder in anderen Worten, die Reizbarkeit ist eine Grundeigenschaft des lebenden Protoplasma, aber sie äussert sich je nach der specifischen Structur desselben unter dem Einfluss der Aussenwelt in specifischen Reizwirkungen.
Denselben Gedankengang hat Claude Bernard (IV. 1a) in folgender Weise ausgedrückt: La sensibilité, considérée comme propriété du système nerveux, n’a rien d’essentiel ou de spécifiquement distinct; c’est l’irritabilité spéciale au nerf, comme la propriété de contraction est l’irritabilité spéciale au muscle, comme la propriété de sécrétion est l’irritabilité spéciale à l’élément glandulaire. Ainsi, ces propriétés sur lesquelles on fondait la distinction des plantes et animaux ne touchent pas à leur vie même, mais seulement aux mécanismes par lesquels cette vie s’exerce. Au fond tous ces mécanismes sont soumis à une condition générale et commune, l’irritabilité.
Bei der allgemeinen Besprechung der Reizbarkeit ist endlich noch einer besonderen Erscheinung gleich zu gedenken, der Reizfortpflanzung oder Reizleitung. Ein Reiz, der einen kleinen Punkt an der Oberfläche eines Protoplasmakörpers trifft, ruft nicht nur an diesem, sondern auch an weit abgelegenen Punkten eine Reizwirkung hervor. Die Veränderung, die der Protoplasmakörper an der Reizstelle erfährt, muss sich also bald rascher, bald langsamer dem ganzen Körper mittheilen. Die Reizleitung ist im Allgemeinen rascher im thierischen Körper; für die Nerven des Menschen beträgt sie zum Beispiel 34 Meter in der Sekunde, langsamer verläuft sie im pflanzlichen Protoplasma.
Man stellt sich vor, dass die reizbare Substanz ein in labilem Gleichgewicht befindliches System materieller, mit hohen Spannkräften ausgerüsteter Theilchen ist. In einem solchen System genügt ein geringer Anstoss eines Theilchens, um auch alle anderen Theilchen mit in Bewegung zu versetzen, indem das eine auf das andere seine Bewegung überträgt. Daher erklärt sich auch, dass oft durch eine kleine Reizursache eine ausserordentlich grosse Reizwirkung hervorgerufen werden kann, gleichwie ein durch einen Funken entzündetes Pulverkörnchen eine gewaltige Pulvermasse zur Explosion bringen kann.
Eigenthümlich für die organische Substanz ist endlich die Fähigkeit, dass sie nach Aufhören der Reizursache nach einer kürzeren oder längeren Periode der Ruhe oder der Erholung mehr oder minder wieder in den ursprünglichen Zustand zurückkehrt. Ich sage: mehr oder minder. Denn oft wird auch unter dem Einfluss langdauernder oder häufig wiederkehrender, gleichartiger Reize die organische Substanz in ihrer Structur und ihrem Reactionsvermögen dauernd geändert. Es treten dann Erscheinungen ein, die man unter die allgemeinen Begriffe „der Reiznachwirkung und der Reizgewöhnung“ zusammenfasst.
Ob ein Protoplasmakörper reizbar ist und auf Veränderungen seiner Umgebung reagirt, sind wir gewöhnlich nicht im Stande wahrzunehmen. Die meisten Reizwirkungen bleiben uns verborgen. Am deutlichsten sichtbar werden sie uns in den Fällen, in denen das Protoplasma durch auffällige Veränderungen seiner Form oder durch Bewegungen den Reiz beantwortet. Aber wie eben hervorgehoben wurde, ist dies nur ein beschränktes, kleines Gebiet der Reizwirkung, wenn auch für den Forscher das wichtigste, weil hier die Untersuchung angreifen kann. In Folge dessen werden wir denn auch im Folgenden hauptsächlich zu untersuchen haben, wie das Protoplasma auf die oben angeführten 5 Gruppen von Reizursachen durch Bewegungen antwortet. Dieser Umstand hat mich auch veranlasst, bei der Besprechung der Lebenseigenschaften der Elementarorganismen mit der Contractilität zu beginnen.
I. Thermische Reize.
Eine der wesentlichsten Bedingungen für die Lebensthätigkeit des Protoplasma ist die Temperatur der Umgebung. Es gibt eine obere und eine untere Grenze derselben, deren Ueberschreitung in allen Fällen den sofortigen Tod des Protoplasma zur Folge hat. Dieselbe ist allerdings nicht immer ein und dieselbe für alle Protoplasmakörper. Einige vermögen einen geringeren, andere einen grösseren Widerstand extremeren Temperaturgraden entgegenzusetzen.
Das Maximum der Wärme bewegt sich gewöhnlich für thierische und pflanzliche Zellen um 40 °C. herum. Schon eine Einwirkung von wenigen Minuten genügt, um im Protoplasma Verquellungen und Gerinnungen und dadurch eine Zerstörung der reizbaren Structur und des Lebens überhaupt hervorzurufen. Amöben, in Wasser von 40 °C. gebracht, sterben sofort ab, indem sie ihre Pseudopodien einziehen und „sich in eine kugelförmige, scharf und doppelt conturirte Blase umwandeln, welche einen grossen, trüben, in durchfallendem Licht bräunlich aussehenden Klumpen einschliesst.“ (Kühne IV. 15.) Die gleiche Temperatur hat, wie man sich kurz ausdrückt, den „Wärmetod“ bei Aethalium septicum unter eintretender Coagulation zur Folge. Für Actinophrys dagegen liegt die Grenze, wo augenblicklicher Tod eintritt, bei 45° und für Zellen von Tradescantia und Vallisneria erst bei 47–48 °C. (Max Schultze I. 29).
Auf viel höhere Temperaturen ist das Protoplasma bei einzelnen Organismen angepasst, die in heissen Quellen vegetiren. Im Carlsbader Sprudel fand Cohn Leptothrix und Oscillarien bei 53 °C. und Ehrenberg beobachtete ebenso Algenfilze in warmen Quellen von Ischia.
Aber auch damit ist die oberste Temperaturgrenze, bei welcher sich lebende Substanz eine Zeit lang zu erhalten vermag, noch nicht erreicht. Denn endogene Sporen von Bacillen, welche ausserordentlich derbe Hüllen besitzen, bleiben keimfähig, wenn sie vorübergehend in Flüssigkeit auf 100° erhitzt werden; manche ertragen 105° bis 130° (de Bary IV. 5a pag. 41). Trockene Hitze von 140° vernichtet erst bei dreistündiger Einwirkung mit Sicherheit alles Leben.
Viel schwieriger als die obere ist die untere Temperaturgrenze, durch welche unmittelbar der „Kältetod“ herbeigeführt wird, zu bestimmen. Im Allgemeinen wirken Temperaturen unter 0° weniger schädlich auf das Protoplasma ein, als hohe Temperaturen. Bei Echinodermeneiern, die sich in den Vorstadien zur Theilung befinden, wird zwar der Theilungsprozess momentan unterbrochen, wenn sie in eine Kältemischung von −2–3 °C. gebracht werden (IV. 12), spielt sich dann aber in normaler Weise weiter ab, wenn man die Eier nach viertelstündiger Dauer der Abkühlung langsam wieder erwärmt. Ja selbst bei 2stündiger Abkühlung erfährt ein grosser Theil der Eier keine andauernde Schädigung. Pflanzenzellen können gefrieren, so dass Eiskrystalle im Zellsaft anschiessen, und zeigen, wenn sie allmählich aufgethaut werden, wieder das Phänomen der Protoplasmaströmung (IV. 15).
Durch das plötzliche Gefrieren treten im Protoplasma von Pflanzenzellen erhebliche Formveränderungen ein, werden aber beim Aufthauen wieder rückgängig gemacht. Als Kühne (IV. 15) Tradescantiazellen in einer Kältemischung von −14 °C. etwas länger als 5 Minuten gefrieren liess, fand er bei der Untersuchung in Wasser an Stelle des normalen Protoplasmanetzes eine grosse Zahl gesonderter, runder Tropfen und Klümpchen. Diese begannen aber schon nach wenigen Secunden eine lebhafte Bewegung zu zeigen, nach einigen Minuten sich zu verbinden und bald wieder in ein in lebhafter Strömung befindliches Netzwerk überzugehen.
Einen zweiten Versuch beschreibt Kühne in folgender Weise: „Legt man ein Präparat mit Tradescantiazellen mindestens während einer Stunde in einen mit Eis auf 0° abgekühlten Raum, so zeigt ihr Protoplasma bereits eine Neigung zum Zerfallen in einzelne Tröpfchen. Wo noch ein Netzwerk existirt, ist es aus ausserordentlich feinen Fäden gebildet, die nur stellenweise mit grösseren Kugeln und Tropfen besetzt sind. Viele freie Kugeln befinden sich unabhängig davon in der Zellflüssigkeit, wo sie unter lebhaften, zuckenden Bewegungen, ohne ergiebige Ortsbewegungen zu machen, sich um ihre Axe drehen. Wenige Minuten später vereinigen sich jedoch diese freien Kugeln mit den feinen Fäden oder verschmelzen mit anderen daran hängenden Kugeln, bis das Bild des fliessenden Protoplasmanetzes völlig wieder hergestellt ist.“
Bei den Pflanzen ist im Allgemeinen die Widerstandskraft gegen Kälte um so grösser, je wasserärmer die Zellen sind: lufttrockene Samen und Winterknospen, deren Zellen fast rein protoplasmatisch sind, können sehr hohe Kältegrade ertragen, während junge Blätter mit ihren saftigen Zellen schon bei Nachtfrösten absterben. Doch auch die verschiedene specifische Organisation der einzelnen Pflanzen, resp. ihrer Zellen, bedingt eine sehr ungleiche Widerstandskraft gegen Kälte, wie die tägliche Erfahrung lehrt (Sachs IV. 32b).
Ausserordentlich hohe Kältegrade können Mikroorganismen aushalten. Wie Frisch fand, wird die Entwicklungsfähigkeit von Bacillus anthracis sowohl von Sporen als auch von vegetativen Zellen nicht beeinträchtigt, wenn sie bei −110 °C. in Flüssigkeit eingefroren und nachher wieder aufgethaut werden.
Noch ehe die oben für einzelne Fälle näher angegebenen, extremen Temperaturgrenzen erreicht werden, welche den unmittelbaren Wärme- oder Kältetod des Protoplasmas zur Folge haben, tritt schon zuvor eine Erscheinung ein, welche man als Wärmestarre oder Wärmetetanus und als Kältestarre bezeichnet. Man versteht darunter einen Zustand, in welchem die Eigenschaften des Protoplasmas, in denen sich sein Leben bethätigt, namentlich alle Bewegungserscheinungen, aufgehoben sind, so lange eine bestimmte Temperatur einwirkt, aber bei geeigneter Veränderung derselben nach einer Periode der Erholung wiederkehren.
Die Kältestarre stellt sich gewöhnlich bei Temperaturen ein, die sich um 0° herum bewegen; die Wärmestarre erfolgt einige Grade tiefer, als das Wärmemaximum beträgt, bei welchem das Protoplasma sofort abstirbt. In beiden Fällen verlangsamt sich die Protoplasmabewegung mehr und mehr und hört bald ganz auf. Amöben, Rhizopoden, weisse Blutkörperchen ziehen ihre Ausläufer ein und wandeln sich in kugelige Klümpchen um. Pflanzenzellen gewinnen häufig das schon oben mit den Worten von Kühne beschriebene Aussehen. Langsame Erhöhung der Temperatur bei Kältestarre, Erniedrigung derselben bei Wärmestarre lässt die Lebenserscheinungen zur Norm zurückkehren. Hält freilich der Starrezustand lange Zeit an, so kann er zum Tod führen, und zwar wird durchgängig Kältestarre viel länger und besser als Wärmestarre vertragen. Beim Absterben gerinnt und trübt sich das Protoplasma und beginnt unter Quellungserscheinungen bald zu zerfallen.
Zwischen Kälte- und Wärmestarre liegt ein Gebiet, in welchem sich je nach der Höhe der Temperatur die Lebensprocesse mit ungleicher Intensität abspielen. Namentlich sind es die Bewegungen, welche sich mit verschiedener Schnelligkeit vollziehen. Sie nehmen bei Steigerung der Wärme bis zu einem bestimmten Maximum zu, welches mit einem bestimmten Temperaturgrad zusammenfällt, den man als Temperaturoptimum bezeichnet. Dasselbe liegt immer mehrere Grad unter der Temperaturgrenze, bei welcher die Wärmestarre erfolgt. Wenn die Erwärmung noch über das Temperaturoptimum hinaus wächst, so hat sie eine immer mehr zunehmende Verlangsamung der Protoplasmabewegung zur Folge, bis endlich der Punkt erreicht ist, an welchem der Starrezustand einsetzt.
Ein wichtiges Object, an welchem man den Einfluss der Erwärmung studirt hat, sind die weissen Blutkörperchen, wobei man sich am besten des heizbaren Objecttisches von Max Schultze oder des Sachs’schen Wärmekastens bedient. Im frisch entleerten Tropfen Blut zeigen sie kugelige Gestalt und sind bewegungslos; unter den entsprechenden Vorsichtsmaassregeln erwärmt, beginnen sie langsam Pseudopodien auszustrecken und sich fortzubewegen; ihre Formveränderung wird um so lebhafter, je mehr die Temperatur bis zu dem jeweiligen Optimum zunimmt. Bei Myxomyceten, Rhizopoden und Pflanzenzellen äussert sich die Zunahme der Erwärmung in einer Beschleunigung der Körnchenströmung. So legten nach Messungen von Max Schultze (I. 29) die Körnchen bei den Haarzellen von Urtica und Tradescantia bei gewöhnlicher Temperatur einen Weg von 0,004–0,005 mm in der Secunde zurück, bei Erwärmung bis auf 35 °C. einen Weg von 0,009 mm in der Secunde. Bei Vallisneria liess sich die Circulation bis 0,015 mm und bei einer Charaart sogar bis 0,04 mm in der Secunde beschleunigen. Zwischen langsamer und beschleunigter Bewegung kann die Differenz so gross sein, dass im ersten Falle die Länge eines Fusses etwa in 50 Stunden, im zweiten Fall in ½ Stunde durchlaufen wird.
Nägeli (III. 16) hat für die Geschwindigkeitszunahme der Körnchenströmung in den Zellen von Nitella bei Zunahme der Temperatur folgende Werthe erhalten: Um einen Weg von 0,1 mm zurückzulegen, brauchte die Plasmaströmung 60 Secunden bei 1 °C., 24 Secunden bei 5 °C., 8 Secunden bei 10 °C., 5 Secunden bei 15 °C., 3,6 Secunden bei 20 °C., 2,4 Secunden bei 26 °C., 1,5 Secunden bei 31 °C., 0,65 Secunden bei 37 °C. Aus diesen Zahlen geht hervor, dass „die Zunahme der Geschwindigkeit für jeden folgenden Grad einen kleineren Werth darstellt“. (Nägeli, Velten.)
Bemerkenswerth ist endlich noch das Verhalten der Protoplasmakörper gegen plötzliche, grössere Temperaturschwankungen und zweitens gegen einseitige oder ungleiche Erwärmung.
Die Temperaturschwankungen können entweder positive oder negative sein, d. h. sie können auf einer Erhöhung oder Erniedrigung der Temperatur beruhen; die Folge eines solchen grösseren, thermischen Reizes ist vorübergehender Stillstand der Bewegung. Nach einiger Zeit der Ruhe kehrt die Bewegung wieder und nimmt dann die der Temperatur entsprechende Geschwindigkeit an. (Dutrochet, Hofmeister, De Vries.) Velten (IV. 38) bestreitet die Richtigkeit dieser Beobachtungen. Nach seinen Experimenten rufen Temperaturschwankungen innerhalb der Grenzwerthe weder eine Sistirung noch eine Verlangsamung der Protoplasmabewegung hervor, sondern es wird sofort die der betreffenden Temperatur zukommende Geschwindigkeit herbeigeführt.
Ueber die Folgen ungleicher Erwärmung hat Stahl (IV. 35) sehr interessante Versuche an den Plasmodien von Myxomyceten angestellt. Wenn an solchen, während sie sich netzartig auf einer Unterlage ausgebreitet haben, nur ein Theil abgekühlt wird, so wandert das Protoplasma aus dem abgekühlten Theil allmählich in den wärmern hinüber; der eine Theil des Netzes schrumpft ein, der andere schwillt an. Man kann den Versuch in der Weise vornehmen, dass man 2 Bechergläser dicht neben einander stellt und das eine mit Wasser von 7°, das andere mit Wasser von 30° Wärme füllt, und über ihre sich berührenden Ränder einen nassen Papierstreifen, auf welchem sich ein Plasmodium ausgebreitet hat, in der Weise legt, dass das eine Ende in das kühlere, das andere in das wärmere, auf constanter Temperatur erhaltene Wasser taucht. Nach einiger Zeit ist das Plasmodium durch zweckentsprechendes Einziehen und Ausstrecken seiner Protoplasmafäden nach dem ihm zusagenden Medium hinübergekrochen.
In dieser Weise führen freilebende Protoplasmakörper wohl überhaupt Bewegungen aus, die den Stempel des Zweckmässigen an sich tragen, weil sie zugleich zur Erhaltung des Organismus dienen. Die Lohblüthe wandert im Herbst in Folge der Abkühlung der Luft mehrere Fuss tief in die wärmeren Schichten des Lohhaufens hinein, um dort zu überwintern. Im Frühjahr erfolgt dann wieder bei eingetretener Erhöhung der Lufttemperatur die Bewegung in entgegengesetzter Richtung nach den nun wieder mehr erwärmten, oberflächlichen Schichten.
II. Lichtreize.
Wie die Wärme wirkt auch das Licht in vielen Fällen als Reiz auf thierisches und pflanzliches Protoplasma ein. Es ruft charakteristische Gestaltveränderungen an einzelnen Zellen und bestimmte Bewegungsrichtungen an freilebenden, einzelligen Organismen hervor. Namentlich die Untersuchungen der Botaniker haben auf diesem Gebiete interessante Ergebnisse zu Tage gefördert.
Plasmodien von Aethalium septicum breiten sich nur im Dunkeln auf der Oberfläche der Lohe aus, während sie sich im Lichte in die Tiefe derselben zurückziehen. Wenn man auf ein Plasmodium, das auf einer Glasscheibe zierliche Netze gebildet hat, einen Lichtstrahl in einem beschränkten Bezirk auffallen lässt, so strömt alsbald das Protoplasma von den belichteten Stellen hinweg und sammelt sich in den beschatteten an (Barenezki, Stahl IV. 35).
Pelomyxa palustris, ein amöbenartiger Organismus, führt im Schatten durch Einziehen und Ausstrecken breiter Pseudopodien lebhafte Bewegungen aus. Wenn sie von einem mässig starken Lichtstrahl getroffen wird, zieht sie plötzlich alle Pseudopodien ein und wandelt sich zu einem kugeligen Körper um. Erst nach einer Zeit der Ruhe kehrt im Schatten allmählich die amöboide Bewegung wieder. „Wenn dagegen das Dunkel ganz allmählich (etwa innerhalb ¼ Stunde) durch Tageslicht wachsender Helligkeit vertrieben wird, bleibt die Reizwirkung aus, ebenso wenn nach längerer Beleuchtung plötzlich verdunkelt wird“ (Engelmann IV. 6b).
Sehr lebhaft reagiren auf Licht die sternförmigen Pigmentzellen vieler Wirbellosen und Wirbelthiere, welche in der Literatur unter dem Namen der Chromatophoren (IV. 3, 29, 30, 33) bekannt und die Ursache für den oft augenfälligen Farbenwechsel vieler Fische, Amphibien, Reptilien und Cephalopoden sind. Im Licht nimmt z. B. die Haut der Frösche eine hellere Färbung an. Es rührt dies daher, dass schwarze Pigmentzellen, die sich mit reichlich verzweigten Aesten in der Lederhaut ausgebreitet hatten, unter dem Reiz des Lichtes sich zu kleinen, schwarzen Kugeln zusammengezogen haben. Indem sie selbst weniger auffällig werden, kommen ausserdem noch vorhandene, grün und gelb gefärbte und sich nicht contrahirende Pigmentzellen besser zur Geltung.
Ferner erfahren unter dem Einfluss des Lichtes die Pigmentzellen der Retina auffällige Formveränderungen und zwar auch sowohl bei den Wirbelthieren (Boll) als bei den Wirbellosen, z. B. im Cephalopodenauge (Rawitz IV. 31).
Von vielen einzelligen, durch Flimmern oder Geisseln sich fortbewegenden Organismen. Flagellaten, Infusorien, Schwärmsporen von Algen etc. ist es eine bekannte Erscheinung, dass sie sich mit Vorliebe an der nach dem Fenster gekehrten, diffus beleuchteten Seite des Zuchtglases anhäufen oder umgekehrt.
Sehr überzeugend ist ein einfaches, von Nägeli (III. 16) angestelltes Experiment. Eine drei Fuss lange Glasröhre wird mit Wasser, in welchem sich grüne Algenschwärmer (Tetraspora) befinden, gefüllt, und senkrecht aufgestellt. Wenn man nun die Röhre mit schwarzem Papier umwickelt, mit Ausnahme des unteren Endes, auf welches man Licht einfallen lässt, so haben sich in diesem nach einigen Stunden alle Algenschwärmer versammelt, so dass der übrige Theil der Röhre farblos geworden ist. Umwickelt man jetzt das untere Ende, lässt dagegen das obere Ende frei, so steigen alsbald alle Schwärmsporen nach diesem empor und sammeln sich an der Oberfläche des Wassers an.
In hohem Grade gegen Licht empfindlich ist Euglena viridis, (Fig. 44 A IV. 8). Wird in einem auf den Objectträger gebrachten Wassertropfen, der Euglenen enthält, ein nur kleiner Theil beleuchtet, so häufen sich alle Individuen binnen Kurzem im Lichtbezirk an, der, um einen Ausdruck von Engelmann zu gebrauchen, wie eine Falle wirkt. Besonders interessant aber wird dieses Versuchsobject noch dadurch, dass die Lichtperception nur an einen ganz bestimmten, kleinen Theil des Körpers gebunden ist. Jede Euglena besteht aus einem grösseren, hinteren, chlorophyllführenden Theil und dem geisseltragenden, farblosen Vorderende, an welchem sich ein rother Pigmentfleck findet. Nur wenn dieses Vorderende vom Lichtstrahl getroffen oder verdunkelt wird, reagirt der Organismus durch veränderte Richtung seiner Bewegung. (Engelmann.) Ein Theil des Körpers wirkt hier also gewissermaassen als Auge.
Am eingehendsten haben sich mit der Einwirkung des Lichtes auf Schwärmsporen Stahl (IV. 34) und Strasburger (IV. 37) beschäftigt.
Ersterer fasst seine Resultate in folgende Sätze zusammen; „Das Licht übt einen richtenden Einfluss auf den Schwärmsporenkörper in der Weise, dass dessen Längsaxe annähernd mit der Richtung des Lichtstrahls zusammenfällt. Hierbei kann das farblose, cilientragende Ende entweder der Lichtquelle zu- oder von derselben abgewendet sein. Beiderlei Stellungen können, unter sonst unveränderten, äusseren Bedingungen, mit einander abwechseln und dies zwar bei sehr verschiedenen Graden der Lichtintensität. Den grössten Einfluss auf die relative Stellung hat die Intensität des Lichtes. Bei intensiverem Lichte kehren die Schwärmer ihr Mundende von der Lichtquelle ab, sie entfernen sich von derselben; bei schwächerem Lichte bewegen sie sich lichtwärts.“
Die Reizbarkeit gegen Licht ist eine sehr verschiedene, sowohl nach den einzelnen Arten, als auch bei einzelnen Individuen derselben Art, sie ändert sich endlich auch bei demselben Individuum in Folge wechselnder, äusserer Bedingungen. Strasburger bezeichnet dieses ungleiche Reactionsvermögen der Schwärmsporen als Lichtstimmung.
Zwei zur Untersuchung der Lichtstimmung geeignete, sich etwas verschieden verhaltende Objecte sind die Schwärmsporen von Botrydium und Ulothrix.
Wenn Schwärmsporen von Botrydium in einem Tropfen Wasser auf einen Objectträger gebracht werden, so vertheilen sie sich im Dunkeln gleichförmig im Wasser. Werden sie dagegen jetzt beleuchtet, so richten sie sich gleich mit ihrem vordern Ende nach der Lichtquelle und eilen derselben in geraden, somit ziemlich parallelläufigen Bahnen zu. Nach wenigen, meist 1½ bis 2 Minuten, sind fast sämmtliche Schwärmer an der Lichtseite des Tropfens, welche Strasburger der Kürze wegen auch als positiven Rand im Unterschied zum entgegengesetzten oder negativen Rand bezeichnet, angesammelt und schwärmen hier, reichlich copulirend, durcheinander. Wird das Präparat um 180° gedreht, so verlassen alle noch beweglichen Schwärmer momentan den jetzt von der Lichtquelle abgekehrten Rand des Tropfens und eilen wieder dem Lichtstrom zu. Wird die Beobachtung unter einem Mikroskop mit drehbarem Objecttisch angestellt, so kann man durch Drehung des letzteren die Schwärmer zur fortwährenden Aenderung der Bewegungsrichtung bringen. Sie lenken stets in die vom Fenster gegen das Zimmer geradlinig gerichteten Bahnen ein.
Ein etwas abweichendes Verhalten zeigen Ulothrixschwärmer. „Auch diese eilen rasch und auch in fast geraden Bahnen nach dem positiven Tropfenrand; doch nur selten thun sie es alle, vielmehr wird man in den meisten Präparaten einen grösseren oder geringeren Theil derselben ebenso rasch in entgegengesetzter Richtung, also nach dem negativen Rand zu, sich bewegen sehen. Es gewährt nun ein eigenes Schauspiel, wenn die Schwärmer so in entgegengesetzter Richtung und daher mit scheinbar verdoppelter Schnelligkeit an einander vorübereilen. Wird das Präparat um 180° gedreht, so sieht man sofort die an der zuvor positiven Seite angesammelten wieder der negativen Seite, die zuvor an der negativen Seite angesammelten wieder der positiven Seite zueilen. Hier angelangt, bewegen sich die Schwärmer durcheinander, sich je nach den Präparaten schärfer oder weniger scharf am Rande haltend. Ununterbrochen bemerkt man auch, sowohl an der positiven, als auch an der negativen Seite, einzelne Schwärmer, die plötzlich den Rand verlassen und gerade aus durch den Tropfen nach dem andern Rande eilen. Ein solcher Austausch findet ununterbrochen zwischen beiden Rändern statt. Ja nicht selten kann man einzelne Schwärmer, die eben vom entgegengesetzten Rande kamen, wieder dorthin zurückkehren sehen. Noch andere bleiben mitten in ihrem Laufe stehen und eilen nach dem Ausgangsort ihrer Wanderung zurück, um eventuell von dort aus das Spiel längere Zeit pendelartig zu wiederholen.“
Wie fein und rasch die Reaction der Schwärmer auf Licht ist, zeigt folgendes von Strasburger mitgetheiltes Experiment. „Schaltet man, während die Schwärmer auf dem Wege von dem einen Rande des Tropfens zum andern sind, ein Blatt Papier zwischen das Mikroskop und die Lichtquelle ein, so schwenken die Schwärmer sofort zur Seite ab, manche drehen sich selbst im Kreise, doch das dauert nur einen Augenblick, und sie lenken in die verlassenen Bahnen wieder ein (Schreckbewegung). Strasburger (IV. 37) nennt die Schwärmer, welche der Lichtquelle zueilen, lichthold (photophil), solche dagegen, welche sie fliehen, lichtscheu (photophob).
Wie schon oben angedeutet wurde, ist die Ansammlung der Schwärmer am negativen oder positiven Rand des Tropfens, worin sich die besondere Art ihrer Lichtstimmung kund giebt, von äusseren Bedingungen abhängig, von der Intensität des Lichtes, von der Temperatur, von der Durchlüftung des Wassers, von Entwicklungszuständen.
Wenn man mit Schwärmern experimentirt, die bei intensiver Beleuchtung sich am negativen Rand angesammelt haben, so kann man dieselben zum entgegengesetzten Rand hinüber locken. Man muss dann das Licht auf einen ihrer Stimmung entsprechenden Grad allmählich abdämpfen, indem man einen, zwei, drei oder mehr Schirme aus mattgeschliffenem Glas zwischen das Präparat und die Lichtquelle einschiebt. In noch einfacherer Weise kann man das Resultat auch dadurch erreichen, dass man sich mit dem Mikroskop langsam weiter vom Fenster entfernt, und dadurch das einfallende Licht abschwächt.
Durch die Temperatur der Umgebung wird der Grad der Lichtempfindlichkeit bei vielen Schwärmern sehr beeinflusst. Dieselben werden gewöhnlich durch Erhöhung der Temperatur, welche ausserdem auch ihre Beweglichkeit steigert, auf höhere Lichtintensitäten, durch Erniedrigung der Temperatur auf geringere Lichtintensität abgestimmt. Im ersteren Fall werden sie also lichtholder, im zweiten Fall lichtscheuer gemacht.
„Ferner verändern die Schwärmer auch ihre Lichtstimmung im Laufe ihrer Entwicklung, so zwar, dass sie in der Jugend auf höhere Intensitäten als im Alter gestimmt erscheinen.“
Wie durch Experimente von Cohn, Strasburger u. A. festgestellt ist, haben nicht alle Strahlen des Spectrums auf die Bewegungsrichtung der Sporen einen Einfluss, sondern es sind vorzugsweise nur die starkbrechbaren Strahlen, die blauen, indigofarbigen und violetten, welche als Reiz empfunden werden.
Schiebt man zwischen Lichtquelle und Präparat ein Gefäss mit dunkler Kupferoxydammoniaklösung, welche nur blaues, violettes Licht hindurchlässt, so reagiren die Schwärmsporen, als ob sie von gemischtem Tageslicht getroffen würden, dagegen reagiren sie gar nicht auf Lichtstrahlen, welche durch eine Lösung von doppeltchromsaurem Kali, durch die gelben Dämpfe einer Natriumflamme oder durch Rubinglas hindurchgegangen sind.
Ein anderes, mannigfaltiges und wichtiges Gebiet von Lichtwirkung bietet sich uns dar in der Chlorophyllwanderung pflanzlicher Zellen. Licht wirkt als Reiz auf chlorophyllhaltiges Protoplasma und veranlasst es, durch langsame Bewegungen sich an zweckmässigen Stellen innerhalb der Cellulosemembran anzusammeln.
Zum Studium dieser Erscheinungen ist wohl das geeignetste Object die Fadenalge Mesocarpus, an welcher Stahl (IV. 34) sehr überzeugende Beobachtungen angestellt hat.
In den zu langen Fäden vereinigten, cylindrischen Zellen spannt sich ihrer Länge nach ein dünnes Chlorophyllband mitten durch den Saftraum aus, ihn in zwei gleich grosse Hälften zerlegend, und geht mit seinen Rändern in den protoplasmatischen Wandbeleg der Zelle über. Je nach der Richtung des einfallenden Lichtes verändert das Chlorophyllband seine Stellung. Wird es direct von oben oder von unten durch schwaches Tageslicht getroffen, so kehrt es dem Beobachter seine Fläche zu. Wenn man dagegen die Beleuchtung so regulirt, dass nur Strahlen, die dem Mikroskoptisch parallel verlaufen, von der Seite zum Präparat gelangen, so drehen sich die grünen Platten um etwa 90°, bis sie eine genau verticale Stellung einnehmen und jetzt als dunkelgrüne Längsstreifen die sonst durchsichtigen Zellen ihrer Länge nach durchziehen. Zwischen beiden Extremen kann das Band alle möglichen Zwischenstellungen einnehmen, indem es stets seine Fläche senkrecht zur Richtung des einfallenden Lichtes zu orientiren sucht. In warmen Sommertagen erfolgt der Stellungswechsel schon in wenigen Minuten; er erklärt sich aus activen Bewegungen, welche das Protoplasma innerhalb der Zellmembran ausführt.
Auch hier übt wie bei den Schwärmsporen die Intensität des Lichtes einen verschiedenen Einfluss aus. Während diffuse Beleuchtung das oben beschriebene Resultat herbeiführt, bewirkt directes Sonnenlicht eine ganz entgegengesetzte Stellung der Chlorophyllplatte. Diese kehrt jetzt ihre eine Kante der Sonne zu. Wir erhalten also folgendes Gesetz: „Das Licht übt einen richtenden Einfluss auf den Chlorophyllapparat von Mesocarpus. Bei schwächerem Lichte orientirt sich derselbe senkrecht zum Strahlengang, bei intensiver Beleuchtung fällt dessen Ebene in die Richtung des Strahlengangs.“ Die erste Anordnung bezeichnet Stahl als Flächenstellung, die zweite als Profilstellung.
Bei langer Dauer der intensiven Beleuchtung zieht sich das ganze Band zu einem dunkelgrünen, wurmförmigen Körper zusammen, um später unter günstigen Bedingungen wieder seine ursprüngliche Gestalt anzunehmen.
Alle diese verschiedenartigen, unter dem Reiz des Lichtes erfolgenden Bewegungen des Protoplasmas werden den Zweck haben, den Chlorophyllapparat einerseits in eine für seine Function günstige Stellung zum Licht zu bringen, anderseits ihn vor der schädigenden Wirkung zu intensiver Beleuchtung zu schützen.
Dem Einfluss des Lichtes, der bei Mesocarpus sich in so klarer Weise äussert, sind übrigens auch die mit Chlorophyllkörnern versehenen, gewebeartig verbundenen Zellen der Pflanzen unterworfen. Nur sind hier die Erscheinungen von etwas complicirterer Art (Fig. 52).
Wie zuerst Sachs entdeckt hat, sind im intensiven Sonnenlicht die Blätter hellgrüner als bei matter Beleuchtung oder im Schatten. Auf Grund dieser Wahrnehmung konnte Sachs auf intensiv beleuchteten Blättern Lichtbilder künstlich hervorrufen, wenn er sie theilweise mit Papierstreifen bedeckte (IV. 32a). Nach einiger Zeit erscheinen nach Entfernung der Papierstreifen die von ihnen beschattet gewesenen Stellen dunkelgrün auf hellgrünem Grund.
Die ganze Erscheinung erklärt sich auch hier aus dem für Mesocarpus festgestellten Gesetz, wie die Untersuchungen von Stahl (IV. 34) nach den Vorarbeiten von Famintzin, Frank, Borodin ergeben haben. Bei matter Beleuchtung und im Schatten führt das Protoplasma solche Bewegungen aus, dass die Chlorophyllkörner an die dem Licht zugekehrten Aussenflächen der Zellen zu liegen kommen (Fig. 52 A), während sie an den Seitenwänden geschwunden sind. In directem Sonnenlicht dagegen strömt das Protoplasma mit den Chlorophyllkörnern den Seitenwänden (Fig. 52 B) zu, bis die Aussenwand ganz chlorophyllfrei geworden ist. Im ersten Fall nimmt also der ganze Chlorophyllapparat wie bei Mesocarpus zum einfallenden Licht eine Flächenstellung, im zweiten Fall eine Profilstellung ein; dort erscheinen daher die Blätter dunkler, hier heller grün gefärbt.
Ausserdem verändern die Chlorophyllkörner selbst noch ihre Gestalt in der Weise, dass sie bei intensivem Licht kleiner und kugliger werden.
Alle diese Vorgänge führen zu ein und demselben Ziel: „Die Chlorophyllkörner schützen sich bald durch Drehung (Mesocarpus), bald durch Wanderung oder Gestaltveränderung vor zu intensiver Beleuchtung.“ — „Bei schwacher Beleuchtung wird der Lichtquelle die grösste Fläche zugekehrt; das Licht wird so viel wie möglich aufgefangen. Ein entgegengesetztes Verhalten macht sich bei sehr starker Beleuchtung bemerkbar; es wird dem Lichte eine kleinere Fläche dargeboten.“
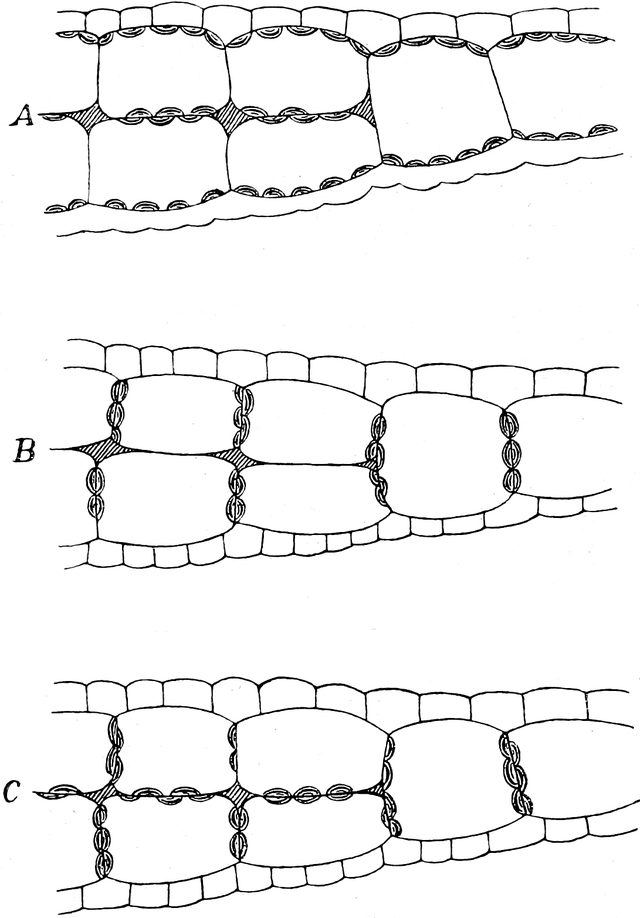
Fig. 52. Querschnitt durch das Blatt von Lemna trisulca
(nach S
TAHL
).
A
Flächenstellung (Tagstellung).
B
Anordnung der Chlorophyllkörner im intensiven Licht.
C
Dunkelstellung der Chlorophyllkörner.
III. Elektrische Reize.
Wie namentlich die Experimente von Max Schultze (I. 29) und Kühne (IV. 15), von Engelmann und von Verworn (IV. 39) gezeigt haben, wirken galvanische Ströme und zwar sowohl die inducirten, als die constanten, als Reiz auf das Protoplasma ein, soweit sie dasselbe direct durchströmen.
Wenn man Staubfadenhaare von Tradescantia (Fig. 53) quer zwischen die dicht genäherten, unpolarisirbaren Elektroden legt und mit schwachen Inductionsschlägen reizt, so sieht man in der vom Strom durchflossenen Strecke des Protoplasmanetzes die Körnchenströmung plötzlich still stehen. Es bilden sich unregelmässige Klumpen und Kugeln an den Protoplasmafäden aus, die an den dünnsten Stellen einreissen und in Nachbarfäden aufgenommen werden. Nach einiger Zeit der Ruhe kehrt die Bewegung wieder, indem die Klumpen und Kugeln von den benachbarten Protoplasmaströmen allmählich ergriffen, mit fortgerissen und zur Vertheilung gebracht werden. Bei starken und oft wiederholten Inductionsschlägen, welche die ganze Zelle getroffen haben, ist eine Rückkehr zur Norm nicht mehr möglich, indem der Protoplasmakörper unter partieller Gerinnung in trübe Schollen und Klumpen verwandelt wird.
Bei Amöben und weissen Blutkörperchen stockt die Körnchenbewegung und das Vorwärtskriechen, wenn sie durch schwache Inductionsschläge gereizt werden, eine kurze Zeit und wird dann wieder in normaler Weise fortgesetzt. Stärkere Inductionsschläge haben zur Folge, dass die Pseudopodien rasch eingezogen werden und der Körper sich zur Kugel zusammenzieht; sehr starke Ströme endlich rufen ein Platzen und eine Zerstörung des zur Kugel contrahirten Körpers hervor.
Durch längere Zeit fortgesetzte Inductionsströme kann man niedere einzellige Organismen stückweise zerstören und verkleinern. Bei Actinosphärium verläuft der Vorgang in folgender Weise. Die Pseudopodien, welche nach den beiden Elektroden gerichtet sind, zeigen bald Varicositäten und werden allmählich, indem das Protoplasma zu Kügelchen und Spindeln zusammenfliesst, ganz eingezogen (Fig. 54). Dann fällt an diesen Stellen die Oberfläche des Körpers immer mehr einer Zerstörung, gewissermaassen einer Art von Einschmelzung, anheim, wobei die im Protoplasma eingeschlossenen Flüssigkeitsvacuolen platzen. Dagegen erhalten sich die senkrecht zur Stromesrichtung stehenden Pseudopodien unverändert. Nach Beseitigung des Reizes erholt sich nach und nach das eventuell bis zur Hälfte oder auf ein Drittel reducirte Individuum und ergänzt die durch Einschmelzung verloren gegangenen Theile.
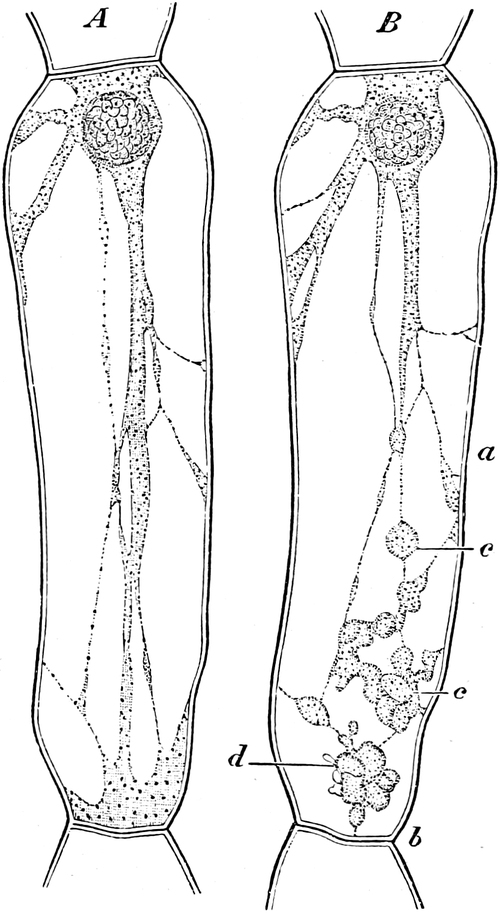
Fig. 53.
A
u.
B
Zelle eines Staubfadenhaares von Tradescantia virginica.
A
Ungestörte Protoplasmaströmung.
B
Protoplasma nach Reizung kugelig zusammengeballt.
a
Zellwand,
b
Querwand zweier Zellen,
c
,
d
Protoplasma zu Klumpen zusammengeballt. (Nach K
ÜHNE
.) Aus V
ERWORN
Fig. 13.
Aehnliches bewirkt die Anwendung des constanten Stromes bei Actinosphärium (Fig. 55), Actinophrys, Pelomyxa, Myxomyceten. Beim Schliessen des Stromes entsteht an dem positiven Pol (der Anode) (Fig. 55 +) eine Erregung, die sich in Einziehung der Pseudopodien und bei längerer Dauer in einer Zerstörung des Protoplasma an der Eintrittsstelle des Stroms kund giebt. Beim Oeffnen desselben hört die Einschmelzung an der Anode sofort auf und es tritt dagegen eine bald vorübergehende Zusammenziehung an der der Kathode zugewandten Körperoberfläche ein.
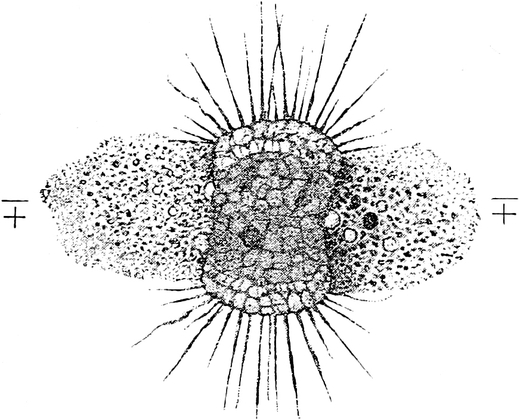
Fig. 54.
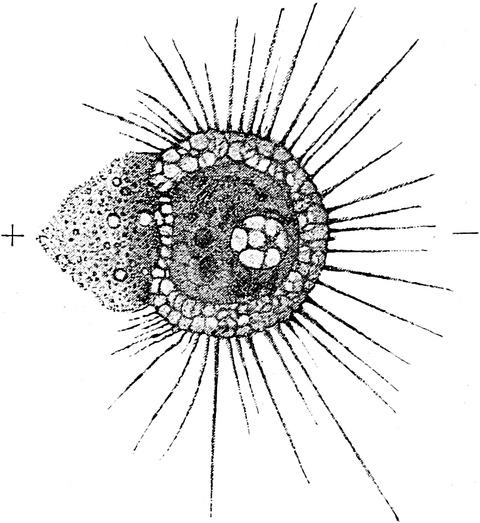
Fig. 55.
Fig. 54. Actinosphärium Eichhornii. Wirkung von Wechselströmen. An beiden Polen gleichmässig fortschreitender Zerfall des Protoplasma. Nach VERWORN Taf. I, Fig. 5.
Fig. 55. Actinosphärium Eichhornii zwischen den Polen eines constanten Stromes. Einige Zeit nach Schliessung des Stromes beginnt an der Anode (+) der körnige Zerfall des Protoplasma. An der Kathode (−) sind die Pseudopodien wieder normal geworden. Nach VERWORN Taf. I, Fig. 2.
Interessanter und wichtiger als diese Reizvorgänge sind vielleicht
die Erscheinungen des Galvanotropismus,
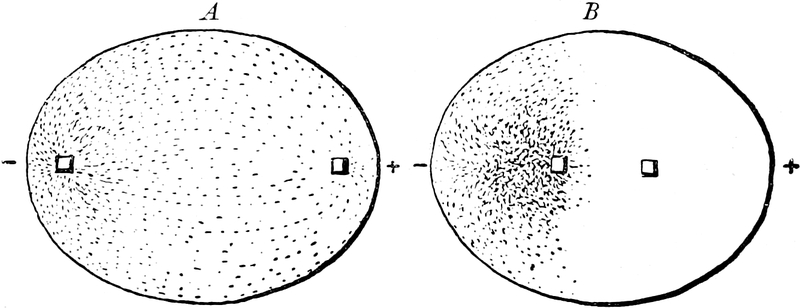
Fig. 56.
Bei Schliessung des constanten Stromes schwimmen in einem Wassertropfen (
A
) alle Paramäcien innerhalb der Stromcurven nach dem negativen Pol und haben nach einiger Zeit sich jenseits des negativen Pols angehäuft (
B
). Nach V
ERWORN
(
IV. 40
) Fig. 20.
Unter Galvanotropismus versteht Verworn die Erscheinung, dass durch den constanten Strom manche Organismen zu Bewegungen in einer bestimmten Richtung veranlasst werden, in ähnlicher Weise wie durch den Lichtstrahl (Heliotropismus). „Bringt man auf einen Objectträger zwischen zwei unpolarisirbare Elektroden einen Tropfen, der Paramäcium aurelia in möglichst grosser Individuenzahl enthält und schliesst dann den constanten galvanischen Strom, so sieht man im Augenblick der Schliessung sämmtliche Paramäcien die Anode verlassen und als dichten Schwarm auf die Kathode zueilen, wo sie sich in grossen Mengen ansammeln. Nach wenigen Secunden ist der übrige Theil des Tropfens vollkommen leer von den Protisten und nur die kathodische Seite desselben zeigt ein dichtes Gewimmel von ihnen. Hier bleiben sie während der ganzen Dauer des Stromes. Wird nun der Strom geöffnet, so sieht man den ganzen Schwarm wieder die Kathode verlassen und in der Richtung nach der Anode hinüberschwimmen. Diesmal findet keine vollkommene Ansammlung an der Anode statt, sondern ein Theil der Protisten bleibt gleichmässig im Tropfen zerstreut, Anfangs jedoch ohne der Kathode näher zu kommen, was erst ganz allmählich einige Zeit nach der Stromöffnung geschieht. Schliesslich sind wieder alle Protisten gleichmässig im Tropfen vertheilt.“
Hat man spitze Elektroden angewandt, so schwärmen die Paramäcien innerhalb der Stromcurven der Kathode zu (Fig. 56 A). Es entsteht ein Bild, wie wenn Eisenfeilspähne von einem Magneten angezogen werden. „Dabei macht man,“ wie Verworn bemerkt, „die Beobachtung, dass, nachdem alle Paramäcien nach dem negativen Pol hinübergewandert sind, die grösste Anhäufung sich hinter, d. h. also jenseits des negativen Pols (vom positiven Pol aus gerechnet), gebildet hat und dass sich nur wenige an der anderen Seite des Pols aufhalten (Fig. 56 B). Bei Oeffnung des Stroms schwimmen die Protisten in der oben beschriebenen Weise wieder in der Richtung nach dem positiven Pol zurück und zwar ebenfalls zuerst mit strenger Innehaltung der Stromcurven, bis allmählich die Bewegung und damit die Vertheilung im Tropfen wieder regellos wird.“
In derselben Weise sind noch manche andere Infusorien, wie Stentor, Colpoda, Halteria, Coleps, Urocentrum, und Flagellaten, wie Trachelomonas, Peridinium galvanotropisch.
Galvanotropismus zeigen auch Amöben. Während sie im ersten Augenblick der Schliessung des constanten Stroms eine Sistirung der Körnchenströmung erfahren, treten dann plötzlich an dem der Kathode zugewandten Ende hyaline Pseudopodien hervor und indem in derselben Richtung die andere Leibessubstanz nachfliesst und immer wieder neue Pseudopodien hervorgestreckt werden, kriechen die Amöben nach der Kathode zu. Bei Umkehr des Stromes kann man auch eine plötzliche, ruckweise Umkehr der Körnchenströmung und ein Kriechen nach der entgegengesetzten Richtung beobachten.
Die Bewegung nach der Kathode kann man als negativen Galvanotropismus bezeichnen. Wie es nun einen negativen und positiven Heliotropismus und Thermotropismus giebt, so lässt sich auch in einzelnen Fällen die Erscheinung eines positiven Galvanotropismus nachweisen. Verworn hat ihn bei Opalina ranarum, bei einigen Bakterien und Flagellaten, wie Cryptomonas und Chilomonas beobachtet. Beim Schliessen des Stromes wandern die genannten Arten anstatt nach der Kathode nach der Anode hin und sammeln sich daselbst an. Sind in einem Tropfen gleichzeitig ciliate Infusorien und Flagellaten vorhanden, dann eilen sie bei Schliessung des constanten Stromes nach entgegengesetzter Richtung auseinander, so dass schliesslich zwei scharf von einander gesonderte Gruppen zu sehen sind, die Flagellaten an der Anode, die Ciliaten an der Kathode. Wurde der Strom nun gewendet, so rückten sie wie zwei feindliche Heere gegeneinander los, bis sie sich wieder an den gegenüberliegenden Polen angesammelt hatten. Jede Stromschliessung vollzog in wenigen Secunden eine scharfe Trennung der vorher in unentwirrbarem Gewimmel vermischten Infusorienformen.
IV. Mechanische Reize.
Druck, Erschütterung, Quetschung wirken als Reiz auf das Protoplasma ein. Schwache mechanische Reize bleiben in ihrer Wirkung auf die nächst betroffene Stelle beschränkt, starke Reize breiten sich auf grössere Entfernung aus und haben eine grössere und schnellere Wirkung als schwächere. Wenn eine Zelle von Tradescantia oder Chara oder ein Plasmodium von Aethalium erschüttert oder an einer Stelle gedrückt wird, so steht die Körnchenbewegung eine Zeit lang still, an den Protoplasmafäden können sich sogar Anschwellungen und Klumpen bilden, in ähnlicher Weise wie nach Reizung mit dem elektrischen Strom. So kommt es häufig, dass beim Herrichten der Präparate schon durch das Auflegen des Deckgläschens die Protoplasmabewegung zum Stillstand gebracht wird. Nach einiger Zeit der Ruhe kehrt sie dann allmählich wieder zurück.
Amöben und weisse Blutkörperchen ziehen bei heftiger Erschütterung ihre Pseudopodien ein und nehmen Kugelgestalt an. Rhizopoden mit schön ausgebreiteten, langen Fäden thun dies oft mit einer solchen Energie, dass die Enden, welche an dem Objectträger kleben, abreissen (Verworn).
Mit einer feinen Nadel kann man eine einzelne Stelle local reizen. Die Wirkung bleibt auf dieselbe beschränkt, wenn der Reiz schwach war, und äussert sich in einem Varicöswerden und einer Verkürzung des Pseudopodiums. Starke und wiederholte Reize rufen auch in den nicht direct getroffenen, benachbarten Pseudopodien Contractionserscheinungen hervor (Fig. 57 B).
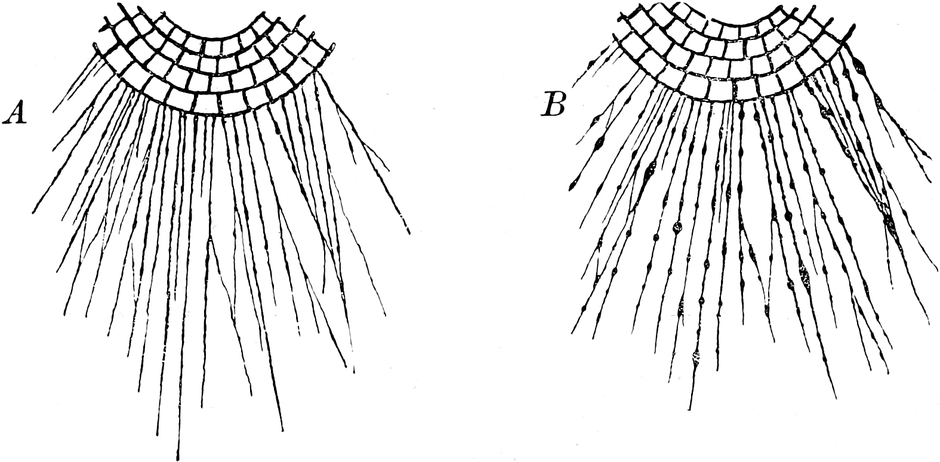
Fig. 57. Orbitolites. Ein Theil der Oberfläche mit Pseudopodien.
Links ungestört, rechts total durch andauernde Erschütterung gereizt. Nach V
ERWORN
(
III. 24
) Fig. 7.
Für die Nahrungsaufnahme der Rhizopoden ist dies von Bedeutung. Wenn ein Infusor oder irgend ein anderes kleines Thier mit einem ausgestreckten Pseudopodium in Berührung kommt, wird es von demselben festgehalten und vom Protoplasma rings umflossen. Dann wird es, indem sich das Pseudopodium allmählich verkürzt, wobei sich auch noch die benachbarten Fäden eventuell betheiligen, in die centrale Protoplasmamasse geschafft, wo es verdaut wird.
V. Chemische Reize.
Ein lebender Zellkörper kann sich bis zu einem gewissen Grade chemischen Veränderungen seiner Umgebung anpassen. Eine Hauptbedingung dabei ist freilich, dass die Veränderungen nicht plötzlich, sondern allmählich eintreten.
Plasmodien von Aethalium gedeihen in einer zweiprocentigen Lösung von Traubenzucker, wenn man den letzteren in langsam steigender Dosis zum Wasser zusetzt (IV. 35). Würde man sie gleich aus reinem Wasser in die chemisch veränderte Umgebung bringen, so würde der plötzliche Wechsel den Tod zur Folge haben, und dasselbe würde eintreten, wollte man sie aus der zweiprocentigen Zuckerlösung gleich in reines Wasser zurückversetzen. Wie man hieraus sieht, muss das Protoplasma Zeit haben, sich, wahrscheinlich durch Zu- und Abnahme seines Wassergehaltes, den veränderten Bedingungen anzupassen.
Meerwasseramöben und Rhizopoden bleiben am Leben, wenn durch allmähliche Verdunstung das in einem offenen Gefäss stehende Meerwasser selbst einen Salzgehalt von 10 Procent erreicht hat. Süsswasseramöben lassen sich allmählich an 4procentige Kochsalzlösung gewöhnen, während sie durch plötzlichen Zusatz schon einer einprocentigen Lösung sich zu Kugeln zusammenziehen und mit der Zeit in glänzende Tropfen zerfallen.
Bei der Anpassung an eine neue chemische Umgebung werden die einzelnen Zellkörper mehr oder minder Veränderungen in ihrer Structur und in ihrer Lebensthätigkeit erfahren. Wenn sich das letztere in einer für uns wahrnehmbaren Weise äussert, werden wir von chemischen Reizwirkungen sprechen. Die auf diesem ausserordentlich umfangreichen Gebiete zu beobachtenden Erscheinungen fallen verschieden aus, je nachdem das chemische Reizmittel allseitig und gleichmässig oder nur in einer bestimmten Richtung, also einseitig, auf den Zellkörper einwirkt.
a) Erste Gruppe von Versuchen.
Chemische Einwirkungen, die von allen Seiten den Zellkörper treffen.
Um die erste Gruppe der Erscheinungen zu erläutern, soll auf das Verhalten des Protoplasma gegen einzelne Gase und gegen die unter, dem gemeinsamen Namen der Anästhetica zusammengefassten Stoffe näher eingegangen werden.
In den Pflanzenzellen hört die Bewegung des Protoplasma in kurzer Zeit auf, wenn man sie anstatt in Wasser in einen Tropfen Olivenöl einlegt und dadurch den Luftzutritt abschliesst (IV. 15). Nach Entfernung des Oeles kann man die Bewegung allmählich wiederkehren sehen.
Die Verlangsamung und schliesslich den Stillstand der Protoplasmaströmung kann man auch dadurch hervorrufen, dass man die atmosphärische Luft durch Kohlensäure oder durch Wasserstoff verdrängt. Zur Anstellung derartiger Experimente hat man besondere Objectträger mit Gaskammern construirt, durch welche man einen Strom von Kohlensäure oder Wasserstoff hindurchleiten kann. Nach einem Aufenthalt der Pflanzenzellen von 45 Minuten bis einer Stunde im Kohlensäurestrome ist die Bewegung durchschnittlich überall erloschen; bei Anwendung des Wasserstoffs ist eine etwas längere Zeit dazu erforderlich (III. 5).
Die Lähmung des Protoplasma kann, wenn sie nicht zu lange Zeit angedauert hat, stets durch Sauerstoffzufuhr wieder aufgehoben werden. „Offenbar bindet das lebendige Protoplasma den Sauerstoff der Umgebung chemisch, und wird die so entstandene feste Sauerstoffverbindung, von der unter normalen Verhältnissen in jedem Protoplasmakörper ein gewisser Vorrath angenommen werden muss, während der Bewegungen beständig zerstört, vermuthlich unter Abspaltung von Kohlensäure.“ (Engelmann. III. 5.) Entziehung von Sauerstoff wirkt daher lähmend auf die Reizbarkeit und überhaupt auf jede Lebensthätigkeit des Protoplasma ein.
Einen deutlich ausgesprochenen Einfluss auf die Lebensthätigkeit der Zelle haben die Anästhetica, Chloroform, Morphium, Chloralhydrat etc. Es wirken diese Stoffe nicht nur, wie man häufig glaubt, auf das Nervensystem ein, sondern ebenso gut auch auf jedes Protoplasma. Die Wirkungsweise ist nur eine graduell verschiedene; es wird die Reizbarkeit der Nervenzellen früher und rascher herabgesetzt und endlich aufgehoben als die Reizbarkeit des Protoplasma. Auch wird bei der medicinischen Verwendung der Narcotica beim Menschen nur eine Einwirkung auf das Nervensystem angestrebt, da eine tiefere Narcose der Elementartheile einen Stillstand des Lebensprocesses und also den Tod zur Folge haben würde. Dass aber die Reizbarkeit des Protoplasma im Pflanzen- und Thierreich ohne bleibenden Schaden vorübergehend aufgehoben werden kann, wird aus folgenden Beispielen klar hervorgehen:
Die Sinnpflanze oder Mimosa pudica ist gegen Berührung sehr empfindlich. Wenn ein Fiederblättchen etwas erschüttert wird, so klappt es sofort zusammen und sinkt aus der aufgerichteten Stellung nach abwärts herab. Gleichzeitig ist sie ein Beispiel für eine rasche Reizfortleitung bei Pflanzen, welche auch ohne Anwesenheit von Nerven, einfach in der Weise vor sich geht, dass der Reizanstoss von einem Protoplasmakörper auf den angrenzenden rasch übertragen wird. In Folge dessen schlagen bei Berührung, je nach der Stärke derselben, nicht nur die unmittelbar betroffenen Blätter, sondern auch die Blätter desselben Zweiges, eventuell sogar der ganzen Pflanze zusammen, wobei gewisse, hier nicht näher zu besprechende, mechanische Einrichtungen in Wirksamkeit treten.
Um nun den Einfluss der Anästhetica zu studiren, stelle man eine mit voller Reizbarkeit ausgestattete Sinnpflanze unter eine Glasglocke und lege noch, wenn sie ihre Blätter vollständig ausgebreitet hat, einen mit Chloroform oder Aether durchtränkten Schwamm darunter (Claude Bernard IV. 1). Nach einer halben Stunde etwa hat durch die Chloroform- oder Aetherdämpfe das Protoplasma seine Reizbarkeit eingebüsst. Nach Entfernung der Glocke kann man die normal ausgebreiteten Blättchen berühren, sogar heftig quetschen oder abschneiden, ohne dass eine Reaction eintritt: der Erfolg ist derselbe wie bei einem mit Nerven versehenen höheren Geschöpf. Und trotzdem ist das Protoplasma, vorausgesetzt, dass der Versuch mit der nothwendigen Vorsicht angestellt worden ist, nicht abgestorben. Denn nachdem die Sinnpflanze einige Zeit in frischer Luft zugebracht hat, schwindet allmählich die Narcose; erst schlagen einzelne Blättchen bei kräftiger Berührung noch langsam zusammen, endlich ist die volle Reizbarkeit wieder zurückgekehrt.
In derselben Weise lassen sich Eier und Samenfäden in Narcose versetzen. Als Richard Hertwig und ich (IV. 12a) lebhaft bewegliche Samenfäden von Seeigeln in eine mit Meerwasser hergestellte 0,5-procentige Lösung von Chloralhydrat brachten, wurde ihre Bewegung schon nach 5 Minuten vollständig aufgehoben, kehrte indessen, nachdem reines Meerwasser zugesetzt worden war, sehr rasch wieder. Auch befruchteten die durch den vorübergehenden Aufenthalt in 0,5 Procent Chloral gelähmten Samenfäden, als sie zu Eiern hinzugefügt wurden, fast ebenso bald als frischer Samen. Nach halbstündiger Einwirkung der Chlorallösung wurde die dadurch hervorgerufene Lähmung der Samenfäden eine stärkere und hielt längere Zeit auch nach Entfernung des schädigenden Mittels an. Erst nach einigen Minuten begannen einzelne Samenfäden schlängelnde Bewegungen, die bald lebhafter wurden. Als sie zu Eiern hinzugefügt wurden, waren diese nach 10 Minuten noch nicht befruchtet, obwohl auf ihrer Oberfläche schon viele Samenfäden sich festgesetzt hatten und bohrende Bewegungen ausführten. Aber auch hier blieb schliesslich die Befruchtung und normale Theilung der Eier nicht aus.
Wie bei den Samenfäden, lässt sich auch bei den Eiern die Reizbarkeit durch eine 0,2–0,5procentige Lösung von Chloralhydrat und von ähnlichen Substanzen beeinflussen, was sich dann bei Zusatz von Samenflüssigkeit in einer Veränderung des normalen Befruchtungsprocesses zu erkennen giebt. Denn während normaler Weise nur ein einziger Samenfaden in das Ei eindringt und sofort die Bildung einer festen Dotterhaut veranlasst, durch welche das Nachdringen weiterer Samenfäden unmöglich gemacht wird, tritt bei chloralisirten Eiern Mehrbefruchtung ein. Dabei konnte festgestellt werden, dass je nach dem Grade der Chloralwirkung, je nach der Dauer der Einwirkung und der Concentration der Lösung, die Zahl der Samenfäden stieg, welche in das Ei gelangt waren, ehe durch Abscheidung der Dotterhaut der Weg für weitere Eindringlinge verlegt war. Offenbar ist durch die chemische Substanz die Reactionsfähigkeit des Eiplasmas herabgesetzt, so dass der vormals durch einen Samenfaden ausgeübte Reiz nicht mehr genügt, sondern durch das Eindringen von 2, 3 und mehr Samenfäden in entsprechender Weise gesteigert werden muss, um das Ei zur Membranbildung anzuregen.
Ein letztes Beispiel wird uns endlich noch zeigen, dass auch chemische Processe in der Zelle durch Anästhesirung eine Hemmung erfahren können. Wie bekannt, rufen die Spaltpilze, welche die Bierhefe bilden, Saccharomyces cerevisiae, in einer Zuckerlösung alkoholische Gährung hervor, wobei Bläschen von Kohlensäure in der Flüssigkeit aufsteigen. Als Claude Bernard (IV. 1) eine Zuckerlösung mit Chloroformwasser oder Aetherwasser versetzte und dann Bierhefe hinzufügte, trat keine Gährung auch unter sonst günstigen Bedingungen ein. Als darauf die Hefepilze von der Chloroformlösung abfiltrirt, mit reinem Wasser ausgewaschen und in reine Zuckerlösung gebracht wurden, riefen sie in kurzer Zeit wieder Gährung hervor; sie hatten also das Vermögen, Zucker in Alkohol und Kohlensäure umzuwandeln, welches durch Chloroform- und Aetherwirkung vorübergehend aufgehoben war, wieder erhalten.
In ähnlicher Weise kann die Chlorophyllfunction der Pflanzen und die mit ihr zusammenhängende Abscheidung von Sauerstoff im Sonnenlicht durch Chloroform sistirt werden (Claude Bernard).
b) Zweite Gruppe von Versuchen.
Chemische Einwirkungen, die in einer bestimmten Richtung den Zellkörper treffen.
Sehr interessante und mannichfaltige Reizerscheinungen werden hervorgerufen, wenn chemische Substanzen nicht allseitig, wie in den eben betrachteten Fällen, sondern nur einseitig, in einer bestimmten Richtung, den Zellkörper treffen. Dieser kann dadurch zu Formveränderungen und zu Bewegungen nach einer bestimmten Richtung veranlasst werden, Erscheinungen, die man unter dem Namen des Chemotropismus (Chemotaxis) zusammen gefasst hat.
Die chemotropischen Bewegungen können entweder nach der Reizquelle zu gerichtet oder im Gegentheil von ihr ab gewandt sein. In ersterem Falle wirken die chemischen Substanzen anziehend, in letzterem abstossend auf den Protoplasmakörper ein. Es hängt dies theils von der chemischen Natur des Stoffes, theils auch von der Eigenart der dem Versuch dienenden Plasmaart, theils auch von dem Concentrationsgrad der chemischen Substanz ab. Ein Stoff, der in geringerer Concentration anziehend wirkt, kann in stärkerer Concentration abstossen. Es liegen hier ähnliche eigenthümliche Verschiedenheiten vor, wie bei der Einwirkung gedämpften und starken Lichtes. Ebenso wie der Heliotropismus ein positiver und ein negativer sein kann, hat man auch einen positiven und einen negativen Chemotropismus zu unterscheiden.
Wir wollen auch hier zuerst die Einwirkung von Gasen, alsdann von Lösungen in das Auge fassen und uns dabei mit einigen sinnreichen Methoden bekannt machen, welche wir besonders dem Botaniker Pfeffer (IV. 26) verdanken.
1) Gase.
Ein gutes chemisches Lockmittel für freibewegliche Zellen ist der Sauerstoff, wie namentlich die Experimente von Stahl, Engelmann und Verworn lehren.
Stahl hat mit Plasmodien von Aethalium septicum experimentirt (IV. 35). Er füllte einen Glascylinder zur Hälfte mit ausgekochtem Wasser, das er zum Luftabschluss mit einer sehr dünnen Oelschicht bedeckte, und legte an die Wand des Cylinders einen Streifen Filtrirpapier, auf dem sich ein Plasmodium ausgebreitet hatte, in der Weise, dass die Hälfte in das Wasser tauchte. Schon nach kurzer Zeit verdünnten sich die im sauerstofffreien Wasser befindlichen Protoplasmastränge, und bald war alles Protoplasma über die Oelschicht, die auf das Plasmodium sonst nicht schädigend einwirkt, emporgewandert nach dem oberen Theile des Cylinders, wo der Sauerstoff der Luft zutreten konnte. Man kann den Versuch auch in der Weise anstellen, dass man ein Plasmodium in einen mit ausgekochtem Wasser ganz gefüllten Cylinder bringt, die Oeffnung mit einem durchlöcherten Kork schliesst und den Cylinder mit der Oeffnung nach unten in einen mit frischem Wasser gefüllten Teller stellt. Bald ist das Plasmodium durch die feinen Löcher des Korks hindurch dem sauerstoffreicheren Medium entgegengewandert.
Interessante Untersuchungen über den richtenden Einfluss des Sauerstoffs auf die Bewegungen der Bakterien hat Engelmann (IV. 7) angestellt und gezeigt, dass man manche Bakterienformen als ein sehr feines Reagens zum Nachweis sehr geringer Sauerstoffmengen benutzen kann. Wird in eine Flüssigkeit, die gewisse Bakterien enthält, eine kleine Alge oder Diatomee gebracht, so ist dieselbe in kurzer Zeit von einer dichten Hülle von Bakterien umgeben, die durch den bei der Chlorophyllassimilation frei werdenden Sauerstoff angezogen werden.
Verworn (IV. 40) sah eine Diatomee von einem Wall bewegungslos liegender Spirochaeten eingeschlossen, die im übrigen Theil des Präparates fast ganz fehlten (Fig. 58). Plötzlich bewegte sich die Diatomee eine Strecke weit aus dem Bakterienhaufen heraus. Die Spirochaeten, welche so von ihrer Sauerstoffquelle im Stich gelassen waren, lagen zunächst einige Augenblicke ruhig, fingen aber bald darauf an, sich lebhaft zu bewegen und in dichten Schaaren wieder zu der Diatomee hinüberzuschwimmen. In 1 bis 2 Minuten waren fast alle wieder um dieselbe versammelt und blieben bewegungslos an ihr liegen.
Aus der Reizwirkung des Sauerstoffs erklärt es sich auch, dass man an mikroskopischen Präparaten nach einiger Zeit fast alle Bakterien, Flagellaten und Infusorien an den Rändern oder um Luftblasen, die sich im Wasser befinden, angesammelt findet.
Einen recht lehrreichen Versuch theilt Verworn (IV. 40) mit. Man bringe eine grosse Menge Paramaecien in ein mit sauerstoffarmem Wasser gefülltes Reagensglas, das man umgekehrt über Quecksilber aufstellt. Bald beginnen die Flimmerbewegungen in Folge des Mangels von Sauerstoff langsam zu werden. Wenn man jetzt eine Blase reinen Sauerstoffs von unten her in das Reagensglas hineinlässt, so sieht man dieselbe schon nach wenigen Sekunden von einer dicken, weissen Hülle von Paramaecien umgeben, „die von Sauerstoffdurst getrieben, wild auf die Sauerstoffblase losstürmen“.
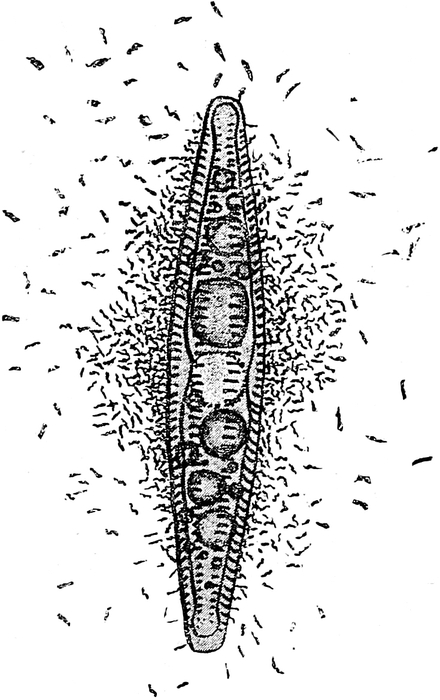
Fig. 58. Eine grosse Diatomee (Pinnularia) von einem Haufen von Spirochaete plicatilis umgeben.
Nach V
ERWORN
(
IV. 40
) Fig. 14.
2) Flüssigkeiten.
Ueber die Reizwirkungen von flüssigen Substanzen liegen systematische Untersuchungen von Stahl und Pfeffer vor.
Stahl (IV. 35) hat als Untersuchungsobject auch hier wieder die Lohblüthe benutzt. Auf diese kann schon einfaches Wasser als Reiz wirken, eine Erscheinung, die Stahl als positiven und negativen Hydrotropismus beschrieben hat. Ein gleichmässig auf einen Streifen feuchten Filtrirpapiers ausgebreitetes Plasmodium zieht sich stets, wenn das Papier auszutrocknen beginnt, nach den Stellen zurück, welche noch am feuchtesten geblieben sind. Wenn man während des Austrocknens über das Papier senkrecht einen mit Gelatine bestrichenen Objectträger in 2 mm Abstand anbringt, so erheben sich an dieser Stelle, durch den von der Gelatine ausgehenden Wasserdampf angezogen, einzelne Aeste vom Plasmodiumnetz senkrecht in die Höhe, bis sie die Gelatine erreichen und sich auf ihr ausbreiten; nach wenigen Stunden kann so das ganze Plasmodium auf die feuchtere Unterlage übergewandert sein. Zur Zeit, wo sich die Myxomyceten zur Fruchtbildung anschicken, tritt an Stelle des positiven der negative Hydrotropismus. Die Plasmodien suchen jetzt im Gegentheil die trockensten Stellen ihrer Umgebung auf und weichen vor feuchten Gelatinestückchen und angefeuchtetem Filtrirpapier, das man in ihre Nähe bringt, zurück.
Die Erscheinungen des Hydrotropismus finden leicht ihre Erklärung darin, dass das Protoplasma ein gewisses Quantum von Imbibitionswasser enthält, welches in gewissen Graden schwanken und auch während der Entwicklung des Zellkörpers zu- und abnehmen kann. Je reichlicher vom Imbibitionswasser das Protoplasma durchtränkt ist, um so lebhaftere Bewegungen wird es im Allgemeinen zeigen. Während der vegetativen Periode hat das Plasmodium von Aethalium die Neigung, seinen Wassergehalt zu erhöhen und wird sich daher nach der Wasserquelle zu bewegen; beim Eintritt in die Fortpflanzungsperiode dagegen flieht es die Feuchtigkeit, weil bei der Sporenbildung der Wassergehalt des Protoplasmas vermindert wird.
Manche chemische Substanzen wirken anziehend, andere abstossend auf Plasmodien ein. Wenn man ein auf feuchtem Substrat ausgebreitetes Netz von Aethalium mit einer Filtrirpapierkugel in Berührung bringt, die von einem Lohaufguss durchtränkt ist, so kriechen alsbald einzelne Plasmastränge nach der Nahrungsquelle hin; schon nach wenigen Stunden sind alle Zwischenräume der Papierkugel vom Schleimpilz durchsetzt.
Um den negativen Chemotropismus zu studiren, bringe man an den Rand eines auf feuchtem Filtrirpapier ausgebreiteten Schleimpilzes einen Kochsalzkrystall oder Salpeter oder einen Tropfen Glycerin. Man wird dann sehen, wie sich unter dem Reiz der im Filtrirpapier sich ausbreitenden, concentrirten Salz- oder Glycerinlösung das Protoplasma von der Reizquelle in immer grösserem Umkreise zurückzieht.
So besitzen die leicht zerstörbaren, nackten Plasmodien die wunderbare Fähigkeit, auf der einen Seite schädlichen Substanzen aus dem Wege zu gehen, auf der anderen Seite ihr Substrat nach allen Richtungen zu durchsuchen und die ihnen zusagenden Stoffe aufzunehmen. „Trifft nämlich irgend einer der zahlreichen Zweige eines Plasmodiums zufällig auf einen an Nährstoffen reichen Boden, so erfolgt sofort ein Zufluss des Plasmas nach der begünstigten Stelle.“
In bahnbrechenden Untersuchungen hat Pfeffer (IV. 26) den Chemotropismus kleiner, freibeweglicher Zellen, wie Samenfäden, Bakterien, Flagellaten, Infusorien genauer erforscht und dabei ein sehr einfaches und sinnreiches Verfahren eingeschlagen.
Pfeffer nimmt feine Glascapillaren, die 4–12 mm lang, an einem Ende zugeschmolzen sind und an dem andern Ende eine Mündung von 0,03–0,15 mm im Lichten je nach der Grösse der zu untersuchenden Organismen besitzen. Dieselben werden etwa ein Drittel oder zur Hälfte mit dem Reizmittel gefüllt, während der nach dem zugeschmolzenen Ende befindliche Raum noch Luft enthält.
Um die Gebrauchsweise zu erläutern, diene Aepfelsäure, in welcher Pfeffer ein Reizmittel entdeckt hat, das die Samenfäden der Farne in hohem Grade anlockt und das wahrscheinlich zu diesem Zwecke auch in der Natur von den Archegonien ausgeschieden wird. Eine Capillare, die mit 0,01% Aepfelsäure gefüllt ist, wird nach sorgfältiger Reinigung ihrer Oberfläche in einen Tropfen Wasser, in dem sich viele Samenfäden der Farne befinden, vorsichtig hineingeschoben. Bei 100- bis 200facher Vergrösserung wird man dann sehen, wie sofort einzelne Samenfäden nach der Oeffnung der Capillare zusteuern, von welcher die Aepfelsäure in das Wasser zu diffundiren beginnt. Sie dringen alsbald in die Capillare selbst ein; ihre Zahl nimmt rasch zu und ist in 5–10 Minuten auf viele Hunderte gestiegen. Nach einiger Zeit sind fast sämmtliche Samenfäden mit Ausnahme weniger Exemplare in das Glasröhrchen hineingeschlüpft.
Wenn man in der angegebenen Weise eine Prüfung mit verschiedenen Concentrationsgraden der Aepfelsäure vornimmt, so ergiebt sich ein ähnliches Gesetz wie bei der Einwirkung verschiedener Wärmegrade auf die Protoplasmaströmung. Von einem gewissen Minimalwerth an, der bei 0,001% liegt, und den man als Schwellenwerth bezeichnen kann, wächst die anziehende Wirkung mit zunehmender Concentration der Lösung bis zu einem bestimmten Punkt, dem Optimum oder Maximum des Reizerfolges; bei weiterer Zunahme der Concentration nimmt erst die Anziehung ab, und hier endlich tritt ein Moment ein, wo der positive in den negativen Chemotropismus umschlägt.
Die stark concentrirte Lösung wirkt geradezu entgegengesetzt und stösst die Samenfäden von sich ab. Wie gering die Menge Aepfelsäure ist, durch welche schon ein Reizerfolg erzielt werden kann, wird man am besten daraus ersehen, dass in einem Röhrchen mit einer 0,001% Lösung sich nur 0,0000000284 mg oder der 35millionste Theil eines Milligramm Aepfelsäure befindet.
Wie schon oben hervorgehoben wurde, muss der chemische Reiz, um eine bestimmte Bewegungsrichtung bei einzelligen Organismen hervorzurufen, nur einseitig oder wenigstens von einer Seite intensiver einwirken. Das ist nun auch in den mitgetheilten Experimenten der Fall; denn indem aus der Capillarmündung die Aepfelsäure in die Umgebung diffundirt, gerathen die Samenfäden, wenn sie zur Capillaröffnung und wenn sie dann weiter durch dieselbe in der Röhre vordringen, in Lösungen von allmählich steigender Concentration. Durch die Diffusion wird eine ungleiche Vertheilung des Reizmittels um den Körper der Samenfäden hergestellt; „erst durch Concentrationsunterschiede wirkt die Aepfelsäure als ein die Bewegungsrichtung bestimmender Reiz.“
In einer homogenen Lösung bleiben die Samenfäden, wie nicht anders zu erwarten ist, gleichmässig vertheilt, doch wird auf dieselben auch unter diesen Verhältnissen eine specifische Reizwirkung ausgeübt, die aber nur auf indirectem Wege und zwar daran zu erkennen ist, dass gewissermaassen die Stimmung der Zellen gegen Aepfelsäure eine Aenderung erfahren hat. Pfeffer konnte hier ähnliche Beziehungen nachweisen, wie sie für die Sinneswahrnehmungen des Menschen durch das Weber-Fechner’sche Gesetz festgestellt sind. „Während der Reiz in geometrischer Progression zunimmt, wächst die Empfindung oder die Reaction in arithmetischer Progression.“
Das in vieler Beziehung sehr wichtige Verhältniss soll wieder an dem Verhalten der Samenfäden gegen Aepfelsäure veranschaulicht werden.
Wenn der Experimentator zu der Flüssigkeit, in welcher sich die Samenfäden der Farne befinden, etwas Aepfelsäure hinzufügt und gleichmässig vertheilt, so dass eine 0,0005%ige Lösung entsteht, so wirkt eine 0,001%ige Aepfelsäure in einer Capillarröhre, die zum Einfangen dienen soll, nicht mehr anlockend, wie es der Fall war zur Zeit, als die Samenfäden in reinem Wasser waren. Vielmehr muss jetzt die Capillarflüssigkeit zur Erreichung des Schwellenwerthes 0,015% und bei einem Gehalt des Wassers von 0,05% Aepfelsäure 1,5% von diesem Reizmittel enthalten; oder allgemeiner ausgedrückt: die Lösung in der Capillare muss 30mal so viel Aepfelsäure enthalten als die Aussenflüssigkeit, aus welcher die Samenfäden eingefangen werden sollen. Die Reizempfänglichkeit oder Reizstimmung der Samenfäden verändert sich also, wenn sie in einem Medium verweilen, das schon eine bestimmte Menge der Substanz enthält, die als Reizmittel dienen soll. Man kann sie so auf künstlichem Wege auf der einen Seite unempfänglich machen gegen schwache Lösungen von Aepfelsäure, die unter anderen Bedingungen als gutes Reizmittel wirken, auf der anderen Seite können sie reizempfänglich gemacht werden gegen stärker concentrirte Aepfelsäurelösungen, welche in reinem Wasser befindliche Samenfäden abstossen.
Wie gegen Licht, verhalten sich die einzelnen Zellkörper auch gegen chemische Stoffe sehr verschieden. Aepfelsäure, welche die Samenfäden von Farnen kräftig anlockt, erweist sich für Samenfäden der Laubmoose völlig wirkungslos. Für diese ist wieder Rohrzucker von 0,1% ein Reizmittel. Samenfäden endlich von Lebermoosen, Characeen reagiren auf keinen von diesen Stoffen.
Eine 1%ige Lösung von Fleischextract oder von Asparagin hat eine kräftig anziehende Wirkung auf Bacterium termo und Spirillum undula und manche andere einzellige Organismen. Schon nach 2 bis 5 Minuten hat sich ein förmlicher Pfropf von Bakterien an der Mündung eines Capillarröhrchens angesammelt, das in einen bakterienhaltigen Wassertropfen geschoben wird.
Wegen des ungleichen Verhaltens der Zellkörper gegen chemische Reize lässt sich die von Pfeffer ausgebildete und verschiedenartig zu modificirende Methode nicht nur zum Einfangen entsprechend empfindlicher Organismen, sondern auch zur Trennung einzelner Arten in Gemischen verwenden, ähnlich wie der Galvanotropismus und Heliotropismus. Mit Lockmitteln versehene Glasröhrchen lassen sich in Flüssigkeiten getaucht als Bakterienfalle und Infusorienfalle benutzen.
Ferner ergiebt sich aus den mitgetheilten Experimenten, dass chemisch besonders empfindliche Organismen gewissermaassen als Reagentien benutzt werden können, um die Gegenwart von Stoffen, die als Reiz wirken, nachzuweisen. So sind nach Engelmann (IV. 7) gewisse Spaltpilze ein ausgezeichnetes Reagens für Sauerstoff, indem schon der trillionste Theil eines Milligramms genügt, um sie anzulocken.
Nicht alle Stoffe, die anlockend wirken, haben einen Nährwerth für die Organismen oder sind ihnen unschädlich; manche führen sogar alsbald zur Vernichtung der angelockten Organismen, wie salicylsaures Natron, salpetersaures Strychnin oder Morphium. Indessen haben die meisten Stoffe, die schädlich auf den Protoplasmakörper einwirken, auch eine abstossende Wirkung auf denselben, so die meisten sauren und alkalischen Lösungen. Citronensäure und Natriumcarbonat wirken schon in 0,2% Concentration deutlich abstossend.
Im Allgemeinen und unter der obigen Einschränkung lässt sich daher immerhin sagen, dass durch den positiven Chemotropismus die Organismen in den Stand gesetzt werden, ihnen zusagende Stoffe aufzusuchen, während sie in Folge des negativen Chemotropismus schädlichen Stoffen ausweichen.
Die Erscheinungen des Chemotropismus sind von grosser Bedeutung auch für das Verständniss vieler Vorgänge im Körper der Wirbelthiere und des Menschen. Auch hier giebt es Zellen, welche auf chemische Reize durch bestimmt gerichtete Bewegungen und Ortsveränderung reagiren. Es sind dies die weissen Blutkörperchen und die Lymphzellen (die Leukocyten oder Wanderzellen).
Die chemische Reizbarkeit der Leukocyten ist durch Versuche von Leber (IV. 17a und b), Massart und Bordet (IV. 20, 21), Steinhaus (IV. 36), Gabritschevsky (IV. 10) und Buchner (IV. 2) festgestellt worden. Wenn man nach dem Verfahren von Pfeffer feine Capillarröhrchen mit einer kleinen Menge „entzündungserregender Substanz“ füllt und in die vordere Augenkammer oder in den Lymphsack des Frosches einführt, so füllen sich dieselben in kurzer Zeit mit einer beträchtlichen Menge von Lymphkörperchen, während Röhrchen mit destillirtem Wasser nicht die gleiche Wirkung äussern. In das Unterhautbindegewebe gebracht, rufen die Röhrchen Auswanderung der Leukocyten (Diapedesis) aus den nächst angrenzenden Capillargefässen und unter Umständen Eiterbildung hervor.
Unter den entzündungserregenden Substanzen stehen in erster Reihe obenan viele Mikroorganismen und ihre Stoffwechselproducte. So erwies sich bei den Versuchen von Leber namentlich ein Extract von Staphylococcus pyogenes sehr wirksam. Dadurch greift die Lehre vom Chemotropismus in die Lehre der durch pathogene Mikroorganismen erzeugten Krankheiten bedeutungsvoll ein. Erst durch genaue Kenntniss des ersteren werden viele wechselvolle Erscheinungen, welche uns das Studium der Infectionskrankheiten darbietet, verständlich gemacht.
Es kann nun wohl von vornherein keinem Zweifel unterliegen, dass wenn die Leukocyten überhaupt durch chemische, von Mikroorganismen erzeugten Substanzen in einen Reizzustand versetzt werden können, dies nach ähnlichen Gesetzen wird geschehen müssen, wie sie für die Zelle im Allgemeinen haben festgestellt werden können. Positiver und negativer Chemotropismus, Reizschwelle, Veränderung der Reizschwelle durch gleichmässige Vertheilung des Reizmittels, Reiznachwirkung werden auch auf diesem Gebiete in Betracht kommen.
So gestaltet sich denn die Beziehung der Leukocyten zu den als Reiz wirkenden Substanzen zu einem complicirten Process, der je nach den vorliegenden Bedingungen sehr verschieden ausfallen kann. Denn die von den Mikroorganismen ausgeschiedenen Stoffwechselproducte werden je nach ihrer Natur und je nach ihrer Concentration bald eine anziehende, bald eine abstossende Reizwirkung ausüben müssen. Ausserdem aber wird die Einwirkung sich noch verändern, wenn die Stoffwechselproducte der Mikroorganismen sich nicht nur am Ort ihrer Entstehung in den erkrankten Gewebspartieen vorfinden und von da aus die Leukocyten reizen, sondern auch noch im Blutstrom selbst in gleichmässiger Vertheilung enthalten sind. Dann werden, wie es bei dem Beispiel mit den Samenfäden und der Aepfelsäure der Fall war (Seite 97, 98), die im Blut gleichmässig vertheilten bakteriellen Stoffwechselproducte die Reactionsweise der Leukocyten gegen die am Orte der Erkrankung angehäuften Stoffwechselproducte modificiren. Hierbei muss das relative Verhältniss der hier und dort vorhandenen, wirksamen Substanz den Ausschlag geben.
Die zahlreichen Möglichkeiten lassen sich unter zwei Hauptfälle gruppiren.
Erster Fall. Im Blut und in den erkrankten Gewebspartieen sind die Stoffwechselproducte in gleicher oder nahezu gleicher Menge vorhanden. Da es hier zu keiner Reizschwelle kommt, können die Leukocyten selbstverständlicher Weise nicht mehr nach dem Orte der Erkrankung auswandern.
Zweiter Fall. Die an beiden Orten angehäufte Substanz ist von ungleicher Concentration, und zwar stehen beide Concentrationen in einem solchen Verhältniss zu einander, dass sich daraus eine für die Leukocyten wirksame Reizschwelle ergibt. Hier können 2 Unterfälle eintreten. Entweder befindet sich die höhere Concentration am Erkrankungsherd oder in den Blutgefässen. Nur im ersteren Fall werden sich die Leukocyten am Erkrankungsherd ansammeln.
Durch Berücksichtigung dieser Verhältnisse scheinen sich mir viele interessante Erscheinungen erklären zu lassen, welche durch französische Forscher, Roger, Charrin, Bouchard (IV. 1b) etc. bei ihren verschiedenartigen Experimenten mit den Stoffwechselproducten des Bacillus pyocyaneus, des Milzbrandbacillus etc. und durch Koch bei seiner Tuberculintherapie beobachtet worden sind. Ich habe einen solchen Erklärungsversuch unternommen in einer kleinen, gemeinverständlichen Schrift: „Ueber die physiologische Grundlage der Tuberculinwirkung, eine Theorie der Wirkungsweise bacillärer Stoffwechselproducte“ (IV. 13) und verweise ich hiermit auf dieselbe betreffs der einzelnen zu erklärenden Krankheitserscheinungen und physiologischen Experimente.
Literatur. IV.
4) Bunge. Vitalismus und Mechanismus.
5b) Dehnecke. Einige Beobachtungen über den Einfluss der Praeparationsmethode auf die Bewegungen des Protoplasmas der Pflanzenzellen. Flora 1881.
6a) Engelmann. Beiträge zur Physiologie des Protoplasmas. Pflügers Archiv. Bd. II. 1869.
8) Derselbe. Ueber Licht- u. Farbenperception niederster Organismen. Pflügers Archiv. Bd. XXIX. 1882.
9) Derselbe. Bacterium photometricum. Ein Beitrag zur vergleichenden Physiologie des Licht- und Farbensinnes. Pflügers Archiv. Bd. XXX.
11) Richard Hertwig. Erythropsis agilis, eine neue Protozoe. Morph. Jahrb. Bd. X.
16) Künstler. Les yeux des infusoires flagellifères. Journ. Micr. Paris. 10. Jahrgang.
18) J. Loeb. Der Heliotropismus der Thiere und seine Uebereinstimmung mit dem Heliotropismus der Pflanzen. Würzburg 1890.
19) Derselbe. Weitere Untersuchungen über den Heliotropismus der Thiere. Pflügers Archiv. Bd. XLVII. 1890.
23) W. Pfeffer. Handbuch der Pflanzenphysiologie. Bd. I. 1881.
24) Derselbe. Locomotorische Richtungsbewegungen durch chemische Reize. Untersuch. aus d. botan. Institut zu Tübingen. Bd. I.
25) Derselbe. Zur Kenntniss der Contactreize. Untersuch. aus dem botan. Institut zu Tübingen. Bd. I. 1885.
27) George Pouchet. D’un œil véritable chez les Protozoaires. C. R. soc. Biol. No. 36.
28) Derselbe. Du role des nerfs dans les changements de coloration des poissons. Journ. de l’anat. et de la phys. 1872.