SIEBENTES CAPITEL. Die Lebenseigenschaften der Zelle. V. Die Erscheinungen und das Wesen der Befruchtung.
Reading edition
Die im sechsten Capitel besprochene Fortpflanzung der Zellen auf dem Wege der Theilung scheint, wenigstens für die Mehrzahl der Organismen, keine in sich unbegrenzte zu sein; der Vermehrungsprocess kommt nach kürzeren oder längeren Zeiträumen zu einem Stillstand, wenn er nicht durch Vorkehrungen, die man unter dem Namen der Befruchtung zusammenfassen kann, wieder von Neuem angefacht wird. Nur die allerniedrigsten Organismen, wie die Spaltpilze, scheinen sich allein durch fortgesetzte Theilung in das Unbegrenzte vermehren zu können, dagegen kann für den grössten Theil des Pflanzen- und Thierreichs das allgemeine Gesetz aufgestellt werden, dass nach einer Periode der Massenzunahme durch Theilung in Zellen, eine Periode eintritt, in welcher zwei Zellen verschiedener Herkunft untereinander verschmelzen müssen, und dass das Verschmelzungsprodukt erst wieder einen Elementarorganismus liefert, der den Ausgang für eine neue Periode der Vermehrung durch Theilung bildet.
In Folge dessen gestaltet sich die Vermehrung der Elementarorganismen und damit das Leben selbst zu einem cyklischen Process. Nachdem Generationen von Zellen durch Theilung entstanden sind, führt der Kreislauf des Lebens immer wieder zu demselben Ausgangspunkt zurück, dass sich zwei Zellen im Befruchtungsakt vereinigen und zum Anfang einer neuen Generationsreihe werden. Derartige Cyclen nennt man Zeugungskreise. Sie treten uns im ganzen Organismenreich in den mannigfachsten Formen entgegen.
Bei den Einzelligen z. B. besteht der Zeugungskreis aus zahlreichen, unter Umständen nach Tausenden zählenden, einzellebenden Individuen. Der befruchtete Elementarorganismus vermehrt sich durch wiederholt eintretende Theilungen in Nachkommen, die der Befruchtung nicht bedürfen, bis ein Zeitpunkt eintritt, wo ein neuer Zeugungsakt zwischen den ungeschlechtlich entstandenen Generationen stattfindet. Am genauesten hat man diese Verhältnisse bisher bei den Infusorien untersucht. So hat Maupas (VII. 30, Seite 407) bei einer Art derselben, bei Leucophrys patula durch zahlreiche Experimente festgestellt, dass erst nach 300 Generationen, die aus einem befruchteten Individuum durch Theilung hervorgegangen sind, der Zeugungskreis abgeschlossen wird, indem die Nachkommen erst jetzt wieder die Neigung und Fähigkeit zur geschlechtlichen Conjugation zeigen. Bei Onychodromus grandis tritt dieser Zustand schon etwa nach der 140sten Generation und bei Stylonichia pustulata nach der 130sten Generation ein.
Bei vielzelligen Organismen bleiben die Zellen, die aus dem befruchteten Ei durch Theilung ihren Ursprung nehmen, vereint, um einen Zellenstaat oder ein organisches Individuum höherer Ordnung zu bilden. Sie lassen sich von dem allgemeinen Gesichtspunkt aus, von dem wir hier die Sexualfrage behandeln, der Gesammtheit der sich durch Theilung ungeschlechtlich vermehrenden Zellindividuen vergleichen, die nach der Copulation aus einem Mutterinfusor entstanden sind. Der Zeugungskreis wird wieder geschlossen, wenn sich im vielzelligen Organismus Geschlechtszellen anlegen, und wenn sie durch ihre Vereinigung in Folge des Befruchtungsprocesses den Ausgangspunkt für neue Generationen sich theilender Zellen abgeben. Die Zeugungskreise können in diesem Fall ein sehr verschiedenes Bild darbieten und zuweilen eine sehr complicirte Beschaffenheit annehmen.
Den einfachsten Fall bieten manche niedere, vielzellige Algen, wie Eudorina, Pandorina. Durch wiederholte Theilung der befruchteten Zelle entsteht eine Zellenkolonie (Fig. 137). Nach einer bestimmten Lebensdauer werden alle Zellen zu Geschlechtszellen. Zum Zwecke der Zeugung löst sich der ganze durch Zelltheilung entstandene Complex wieder in seine einzelnen Bestandtheile auf, welche zum Ausgang für neue Zeugungskreise dienen.
Die hier zur Geltung kommende Fähigkeit jeder Zelle, den ganzen vielzelligen Organismus wieder zu reproduciren, hört auf wirksam zu werden, sowie der vielzellige Organismus einen irgendwie höheren Grad von Ausbildung erreicht. Dann sondert sich das aus einem befruchteten Ei abstammende, sich durch Theilung in’s Ungemessene vermehrende Zellenmaterial in zwei Gruppen, in Zellen, die zum Aufbau der Gewebe und Organe der Pflanze oder des Thieres dienen, und in Zellen, die zur Zeugung bestimmt sind. In Folge dessen bleibt gewöhnlich der Organismus, auch wenn er in die Zeit der Geschlechtsreife eingetreten ist, als solcher erhalten; er sondert nur die Geschlechtszellen von sich ab, um sich in neuen Zeugungskreisen zu vervielfältigen, bis er selbst durch Abnutzung seiner Körperzellen oder durch irgend welche andere Ursachen dem Untergang unterliegt (Nussbaum VII. 33, Weismann VII. 48).
In seiner reinsten Form ist ein streng geschlossener Cyklus nur bei den höheren Thieren anzutreffen, bei welchen eine Vervielfältigung der Individuen allein auf dem Wege der geschlechtlichen Zeugung möglich ist. In vielen Abtheilungen des Thier- und Pflanzenreichs aber läuft neben der geschlechtlichen noch eine ungeschlechtliche Vermehrung einher. Ausser den befruchtungsbedürftigen Zellen lösen sich vom Organismus auch einzelne, der Befruchtung nicht bedürftige Zellen (Sporen, Jungferneier), oder grössere Gruppen von solchen ab (Knospen, Sprossen) und geben auf ungeschlechtlichem Wege durch fortgesetzte Theilung neuen Organismen den Ursprung (vegetative Vermehrung). Oder allgemein ausgedrückt, zwischen zwei Befruchtungsakte schieben sich zahlreiche Folgen von Zelltheilungen ein, die aber nicht einem einzigen physiologischen Individuum höherer Ordnung angehören, sondern sich auf zahlreiche Individuen vertheilen. Zwei Unterfälle sind hier wieder möglich:
In einem Fall ist der aus dem befruchteten Ei entstandene Organismus selbst nicht im Stande, Geschlechtszellen zu bilden; er vermehrt sich allein auf ungeschlechtlichem Wege durch Knospen, durch Sporen oder parthenogenetische Eier. Erst diese oder noch entferntere, auch ungeschlechtlich erzeugte Nachkommen werden geschlechtsreif, erhalten die Fähigkeit zur Ei- und Samenbildung. Man bezeichnet einen solchen Zeugungskreis als einen regelmässigen Generationswechsel (Hydroidpolypen, Trematoden, Cestoden, Parthenogenese der Aphiden, Daphniden etc. Höhere Kryptogamen).
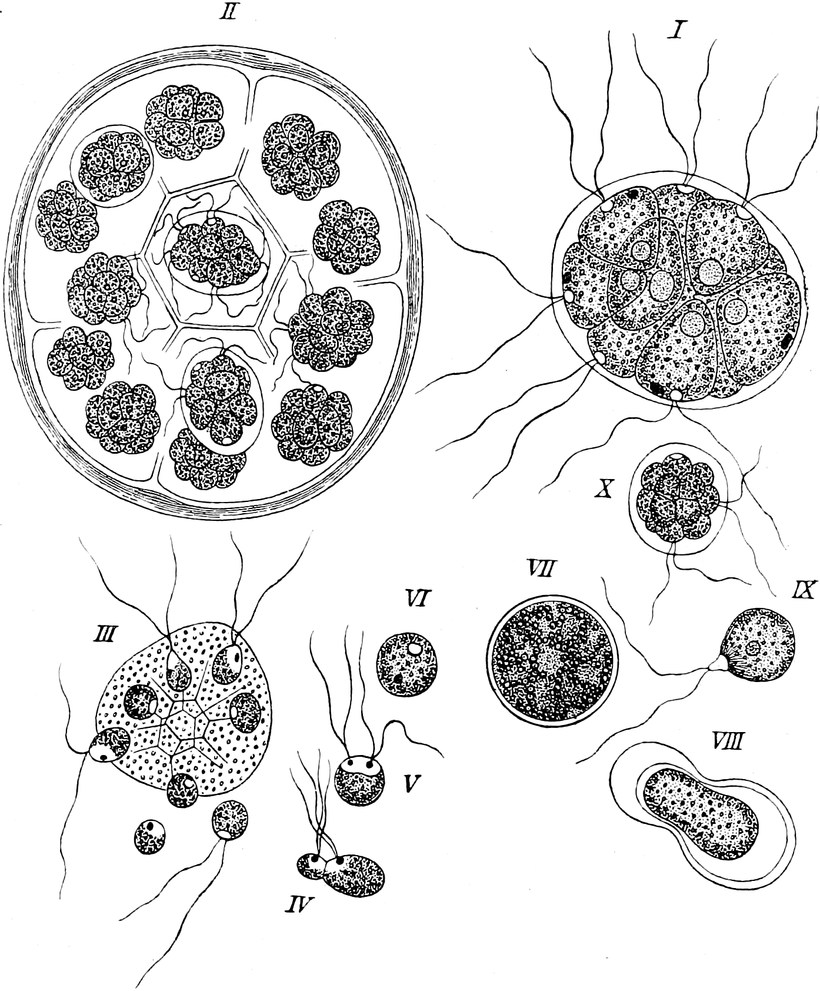
Fig. 137. Entwicklung von Pandorina Morum
nach P
RINGSHEIM
. Aus S
ACHS
Fig. 411.
I
Eine schwärmende Familie;
II
eine solche in 16 Tochterfamilien getheilt;
III
eine geschlechtliche Familie, deren einzelne Zellen aus der verschleimten Hülle austreten;
IV
,
V
Paarung der Schwärmer;
VI
eine eben entstandene,
VII
eine ausgewachsene Zygote;
VIII
Umbildung des Inhaltes einer Zygote in eine grosse Schwärmzelle;
IX
dieselbe frei;
X
junge Familie aus der letzteren entstanden.
Im zweiten Fall vermehrt sich der aus dem befruchteten Ei entstandene Organismus sowohl durch Geschlechtszellen als auch auf ungeschlechtlichem Wege. Die Folge davon ist, dass bei derselben Thier- oder Pflanzenart die einzelnen Zeugungskreise ein verschiedenes Aussehen und einen verschiedenen Umfang gewinnen müssen. Zwischen der ersten und dem Eintritt der zweiten Befruchtung können entweder nur Zellfolgen liegen, welche einem einzigen Individuum angehören, wenn das befruchtete Ei von diesem abstammt, oder es schieben sich Zellfolgen dazwischen, welche sich auf mehrere, unter Umständen sehr zahlreiche Individuen vertheilen, indem erst die Eier eines durch Knospung erzeugten Individuums wieder befruchtet werden. In Folge dessen gewinnt hier die Befruchtung den Charakter eines facultativen, für die Erhaltung der Art nicht durchaus nothwendigen Processes, wenigstens solange nicht der Beweis geführt ist, dass der vegetativen Vermehrung bestimmte Grenzen gesteckt sind. Ein solcher Beweis aber ist zur Zeit für viele Pflanzen nicht zu führen, welche sich durch Reiser, Knollen etc. anscheinend in’s Unbegrenzte vermehren lassen.
Wenn wir im Hinblick auf derartige Fälle auch zugeben müssen, dass der Lebensprocess sich ohne den Akt der Befruchtung einfach durch fortgesetzte Selbsttheilung der Zellen endlos fortsetzen kann, so werden wir auf der anderen Seite doch bei der weiten Verbreitung der Befruchtungseinrichtungen im ganzen Organismenreich schliessen dürfen, dass es sich bei der Befruchtung um fundamentale Fragen des Lebensprocesses und um fundamentale Eigenschaften des Zellenlebens handelt. Die Befruchtung ist ein cellulares Problem.
Der Gegenstand unseres siebenten Capitels steht daher mit dem Studium der Zelle, insbesondere mit ihren Eigenschaften der Reizbarkeit und Theilbarkeit im engsten Zusammenhang: er lässt sich in 2 Abschnitte zerlegen, in die Morphologie und in die Physiologie des Befruchtungsprocesses.
I. Die Morphologie des Befruchtungsprocesses.
Bei drei Objecten ist bisher der Befruchtungsprocess am eingehendsten bis in das feinste Detail hinein verfolgt worden, am thierischen Ei, am Embryosack der Phanerogamen und bei den Infusorien. Trotzdem die drei Objecte den verschiedenen Reichen der Organismenwelt angehören, zeigen sie uns eine wunderbare Uebereinstimmung in allen einzelnen Processen der Befruchtung. Mit ihrem Studium wird daher dieser Abschnitt gleich am zweckmässigsten eröffnet. Dann werden wir uns von allgemeineren, vergleichend morphologischen Gesichtspunkten aus noch zu beschäftigen haben:
1) mit der verschiedenen Form der Geschlechtszellen, mit der Aequivalenz der beim Zeugungsakt betheiligten Zellstoffe und mit dem Begriff „männliche und weibliche Geschlechtszelle“,
2) mit den Ur- und Grundformen der geschlechtlichen Zeugung und der Entstehung der Geschlechtsdifferenzen im Thier- und Pflanzenreiche.
1) Die Befruchtung des thierischen Eies.
Die classischen Objecte für das Studium der Befruchtungsvorgänge sind die Eier der Echinodermen (Hertwig VI. 30, Fol. VI. 19, VII. 14) und die Eier von Ascaris megalocephala (van Beneden VI. 4a, 4b, Boveri VI. 6 etc.). Beide ergänzen sich gegenseitig, indem einzelne Phasen des Processes an dem einen Object leichter als an dem anderen haben festgestellt werden können.
a) Echinodermen-Eier.
Bei den meisten Echinodermen werden die sehr kleinen, durchsichtigen Eier in völlig reifem Zustand in das Meerwasser abgelegt, nachdem sie bereits die Polzellen gebildet (Seite 184) und einen kleinen Eikern erhalten haben. Sie sind nur von einer weichen, für die Samenfäden leicht durchgängigen Gallerthülle umgeben (Fig. 138 A).
Die Samenfäden sind ausserordentlich klein und bestehen, wie es bei den meisten Thieren der Fall ist, 1) aus einem einer Spitzkugel ähnlich aussehenden Kopf, 2) aus einem kleinen, darauf folgenden Kügelchen, dem Mittelstück oder Hals und 3) aus einem feinen, contractilen Faden. Der Kopf enthält Nucleïn, das Mittelstück Paranucleïn und der Faden ist umgewandeltes Protoplasma, einer Geissel vergleichbar.
Werden im Meerwasser die beiderlei Geschlechtsproducte mit einander vermischt, so setzen sich sofort viele Samenfäden an die Gallerthülle eines Eies an; von diesen befruchtet aber normaler Weise nur ein einziger, und zwar derjenige, welcher sich zuerst durch die pendelnden Bewegungen seines Fadens der Eioberfläche genähert hat (Fig. 138 A-C). Wo er mit der Spitze seines Kopfes an diese anstösst, erhebt sich das hyaline Protoplasma, welches die Eirinde bildet, zu einem kleinen Höcker, dem Empfängnisshügel. Hier bohrt sich der Kopf, getrieben von den pendelnden Bewegungen des Fadens, in das Ei hinein, welches in diesem Moment, angeregt von dem Reiz, eine feine Membran, die Dotterhaut, an seiner Oberfläche abscheidet (Fig. 138 C) und darauf wahrscheinlich durch Contraction seines Inhalts etwas Flüssigkeit aus dem Dotter auspresst. In Folge dessen bildet sich, vom Empfängnisshügel beginnend, ein allmählich grösser werdender Zwischenraum zwischen Dotter und Dotterhaut aus. Das Eindringen eines weiteren Samenfadens ist hierdurch unmöglich gemacht.
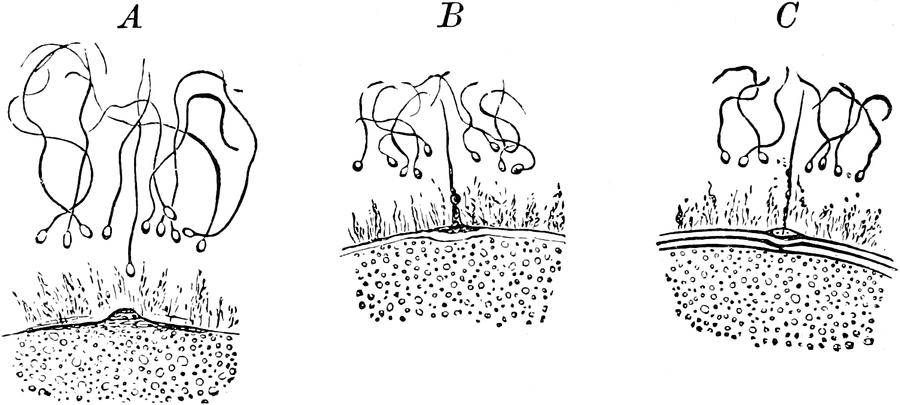
Fig. 138.
A
,
B
,
C
Kleinere Abschnitte von Eiern von Asterias glacialis
nach F
OL
.
Die Samenfäden sind bereits in die Schleimhülle, welche die Eier überzieht, eingedrungen. In
A
beginnt sich eine Vorragung gegen den am weitesten vorgedrungenen Samenfaden zu erheben. In
B
sind Vorragung und Samenfaden zusammengetroffen. In
C
ist der Samenfaden in das Ei eingedrungen. Es hat sich jetzt eine Dottermembran mit einer kraterförmigen Oeffnung ausgebildet.
Der äusseren Copulation der beiden Zellen schliessen sich Vorgänge im Innern des Dotters an, welche als innerer Befruchtungsakt zusammengefasst werden können.
Der Faden hört zu schlagen auf und entzieht sich bald der Wahrnehmung, der Kopf aber dringt langsam weiter in den Dotter hinein (Fig. 139 A) und schwillt dabei durch Aufnahme von Flüssigkeit (Fig. 139 B) zu einem kleinen Bläschen an, das man, da sein wesentlicher Bestandtheil das Nucleïn des Samenfadenkopfes ist, kurzweg als Samenkern bezeichnen kann, wie er sich denn auch in Carmin etc. sehr intensiv färben lässt. Unmittelbar vor ihm, an seiner nach der Eimitte zu gerichteten Seite (Fig. 139 A u. B) ist von Fol neuerdings noch ein viel kleineres Kügelchen nachgewiesen worden, um welches sich der Dotter in radiären Bahnen anzuordnen beginnt (Fig. 140 A) und eine allmählich immer schärfer ausgeprägte und auf grössere Entfernung hin ausgedehnte Strahlenfigur (einen Stern) bildet. Wahrscheinlich leitet es sich von dem Mittelstück des Samenfadens ab, es hat von Fol den Namen des Spermacentrums (männliches Centralkörperchen) erhalten. Ein entsprechendes Kügelchen ist auch dicht am Eikern, an seiner vom Samenkern abgewandten Seite, zu entdecken, das Ovocentrum von Fol (weibliches Centralkörperchen).
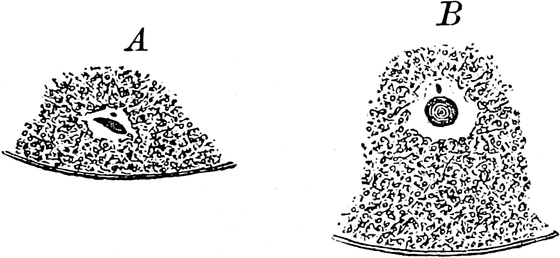
Fig. 139.
A
u.
B
Je ein Stück eines Durchschnittes durch ein befruchtetes Ei von Asteracanthion. Dem Samenkern wandert ein Centralkörperchen (Spermacentrum) voraus.
Nach F
OL
.
Jetzt beginnt ein interessantes Phänomen das Auge des Beobachters zu fesseln (Fig. 140 A u. B). Ei- und Samenkern ziehen sich gleichsam gegenseitig an und wandern mit wachsender Geschwindigkeit durch den Dotter einander entgegen; der Samenkern (sk), dem seine Strahlung mit dem in ihm eingeschlossenen Centralkörperchen stets voran schreitet, verändert rascher seinen Ort, langsamer der Eikern (ek) mit seinem Ovocentrum. Bald treffen sich beide in der Mitte des Eies und werden hier zunächst von einem körnchenfreien Protoplasmahof und nach Aussen von diesem von einer gemeinsamen Strahlung eingeschlossen (Sonnenstadium und Aureola von Fol).
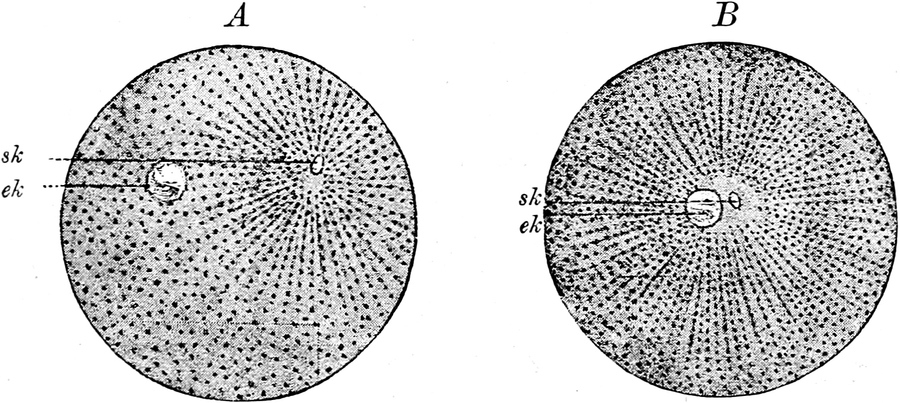
Fig. 140.
A
Befruchtetes Ei eines Seeigels.
O. H
ERTWIG
, Entwgesch. Fig. 18.
Der Kopf des eingedrungenen Samenfadens hat sich in den von einer Protoplasmastrahlung eingeschlossenen Samenkorn (
sk
) umgewandelt und ist dem Eikern (
ek
) entgegengerückt.
B
Befruchtetes Ei eines Seeigels.
O. H
ERTWIG
, Entwgesch. Fig. 19.
Der Samenkern
sk
und der Eikern
ek
sind nahe zusammengerückt und sind beide von einer Protoplasmastrahlung umgeben.
Im Laufe von 20 Minuten verschmelzen darauf Ei- und Samenkern untereinander zum einfachen Keim- oder Furchungskern (Fig. 141 I-IV); erst legen sie sich dicht aneinander, platten sich an der Berührungsfläche gegenseitig ab (Fig. 141 II) und verlieren dann ihre Abgrenzung gegeneinander unter Bildung eines gemeinsamen Kernraumes. In diesem ist die vom Samenfaden abstammende Substanz noch längere Zeit als eine abgesonderte, körnige, in Farbstoffen sich lebhaft imbibirende Nucleïnmasse zu erkennen.
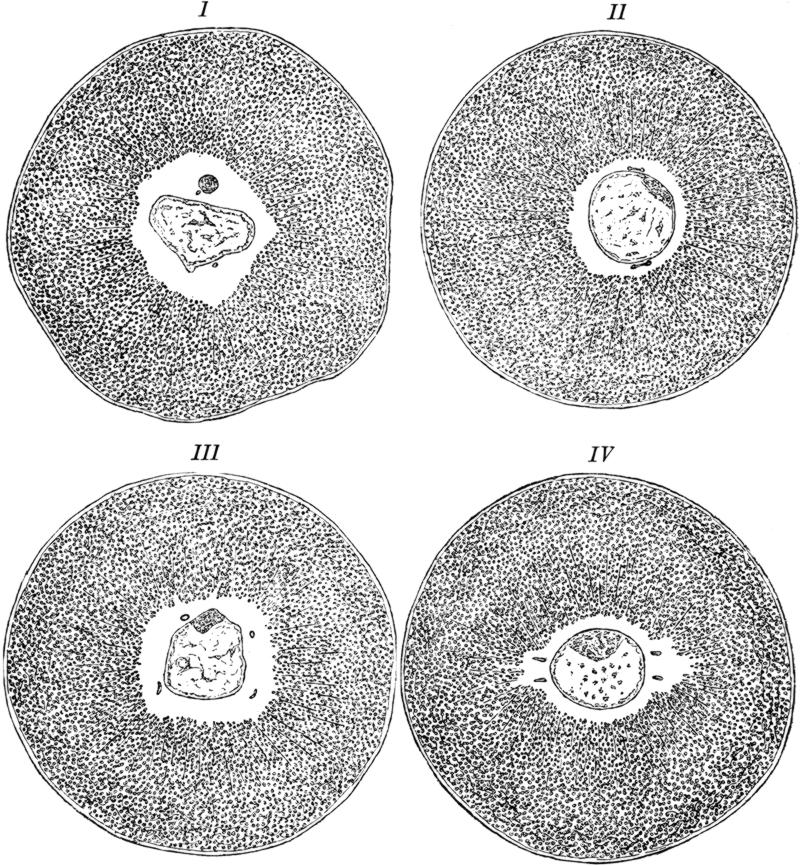
Fig. 141. Die „Quadrille des centres“
nach F
OL
. (VII. 14.)
Der Vereinigung von Ei- und Samenkern folgt die Verschmelzung der Centralkörperchen (Fig. 141 I) bald auf dem Fusse nach. Dieselben liegen, in den homogenen Protoplasmahof eingeschlossen, an entgegengesetzten Punkten des Keimkerns (Fig. 141 II); sie strecken sich alsbald in tangentialer Richtung zur Oberfläche desselben, nehmen die Form einer Hantel an und theilen sich schliesslich in zwei Hälften, die nach entgegengesetzten Richtungen auseinander weichen (Fig. 141 III) und dabei einen Viertheil des Umkreises des Keimkerns zurücklegen. Bei dieser kreisenden Bewegung (Quadrille von Fol VII. 14) nähern sich die beiden auseinander weichenden Theilhälften des männlichen Centralkörperchens den entsprechenden Theilhälften des weiblichen Centralkörperchens und treffen in einer Ebene des Kerns zusammen, welche unter rechtem Winkel die Ebene schneidet, durch welche ihre Ausgangsstellung bezeichnet wurde (Fig. 141 IV). Hier verschmelzen sie untereinander zu den Polkörperchen der ersten Theilungsfigur. Hiermit kann der Befruchtungsvorgang als abgeschlossen betrachtet werden, da alle weiteren Veränderungen mit der Kerntheilung unmittelbar zusammenhängen.
b) Ascaris megalocephala.
Einen weiteren Einblick in den Befruchtungsvorgang liefert uns das Ei von Ascaris megalocephala. Hier dringt schon vor der Bildung der Polzellen der Samenkörper in das Ei ein (vergl. Fig. 127 und Text S. 191) und kommt schliesslich in die Mitte zu liegen (Fig. 142 I), während das Keimbläschen sich in die Polspindel in der früher beschriebenen Weise umwandelt, an die Oberfläche des Dotters emporsteigt und mehreren Polzellen den Ursprung giebt. Aus der Kernsubstanz des eingedrungenen Samenkörpers, sowie aus der Hälfte der zweiten Polspindel (Fig. 142 I) entwickelt sich je ein bläschenförmiger Kern. Ei- und Samenkern (Fig. 142 II) wandern alsdann aufeinander zu, wobei in diesem Fall, umgekehrt wie bei den Echinodermen, der central gelegene Kern der männliche, der von der Oberfläche ihm entgegendringende der weibliche ist; beide sind annähernd von gleicher Grösse, beide legen sich dicht zusammen, bleiben aber eine Zeit lang getrennt, indem sie in ein kurzes Ruhestadium eintreten. Auch wenn sie sich später zur ersten Theilspindel vorbereiten, erfolgt noch keine Verschmelzung. In Folge dessen und wegen des weiteren Umstandes, dass bei Ascaris megalocephala sich während der Kerntheilung nur wenige, beträchtlich grosse und daher leicht zu zählende Kernsegmente anlegen, war van Beneden (VI. 4a, VI. 4b) in der Lage, unsern Einblick in den Befruchtungsvorgang durch folgende fundamentale Entdeckung zu vervollständigen:
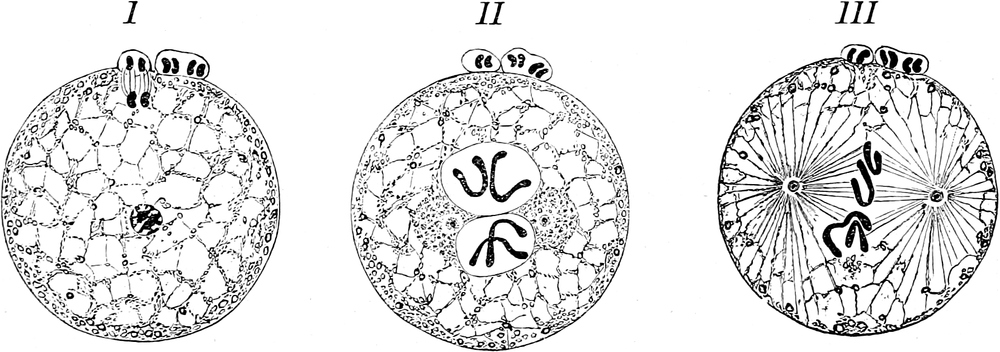
Fig. 142. (
I
–
III
). Drei Schemata, um den Verlauf des Befruchtungsprocesses bei Ascaris megalocephala bivalens zu veranschaulichen.
Bei der Vorbereitung zur ersten Theilspindel wandelt sich das Nucleïn im Ei- und Samenkern, während sie noch voneinander getrennt sind, in einen feinen Faden um, der sich in mehreren Windungen im Kernraum ausbreitet. Jeder Faden wird darauf in zwei gleich grosse gewundene Schleifen, in die Kernsegmente, abgetheilt (Fig. 142 II). Zu beiden Seiten des Kernpaares treten zwei Polkörperchen auf, deren Herkunft zu beobachten an diesem Object noch nicht geglückt ist. Jetzt verlieren die beiden bläschenförmigen Kerne ihre Abgrenzung gegen den umgebenden Dotter.
Zwischen beiden Polkörperchen (Fig. 142 III), die von einem anfangs schwachen, später deutlicher werdenden Strahlensystem umgeben werden, bilden sich Spindelfasern aus und ordnen sich die durch die Auflösung der zwei Kernblasen frei gewordenen 4 Kernsegmente so an, dass sie der Mitte der Spindel von Aussen aufliegen.
Beim Ei vom Pferdespulwurm erfolgt also die Vereinigung der beiden Geschlechtskerne, welche die Befruchtung abschliesst, erst bei der Umbildung zur ersten Theilspindel, zu welcher sie gleich viel beitragen. Der von van Beneden festgestellte, wichtige Fundamentalsatz heisst daher: Die Kernsegmente der ersten Theilspindel stammen zur einen Hälfte vom Eikern, zur anderen Hälfte vom Samenkern ab, sie können als männliche und weibliche unterschieden werden. Da nun auch hier wie sonst bei der Kerntheilung die vier Segmente sich der Länge nach spalten und dann nach den zwei Polkörperchen zu auseinander weichen, bilden sich zwei Gruppen von vier Tochterschleifen, von denen zwei männlicher und zwei weiblicher Herkunft sind. Jede Gruppe wandelt sich dann in den ruhenden Kern der Tochterzelle um. Damit ist der unumstössliche Beweis geführt, dass jedem Tochterkern in jeder Eihälfte, die durch den ersten Furchungsprocess entsteht, genau die gleiche Menge Nucleïn vom Eikern wie vom Samenkern zugeführt wird.
2) Die Befruchtung der Phanerogamen.
Mit den Ergebnissen auf thierischem Gebiet harmoniren in vollkommenster Weise die Entdeckungen des Befruchtungsprocesses bei den Phanerogamen, welche wir in erster Reihe den Arbeiten von Strasburger (VII. 38) und Guignard (VII. 15) verdanken. Die für das Studium geeigneten Objecte bieten uns hier die Liliaceen, hauptsächlich Lilium Martagon und Fritillaria imperialis. Dem Samenfaden entspricht bei den Phanerogamen das Pollenkorn, dem thierischen Ei die im Fruchtknoten des Stempels eingeschlossene, den wichtigsten Theil des Embryosackes bildende, pflanzliche Eizelle.
Wenn das Pollenkorn auf die Narbe des Griffels gelangt ist, beginnt sein Inhalt aus einer erweichten Stelle der Membran hervorzutreten und zu einem langen Schlauch (Fig. 143) auszuwachsen, der sich im Griffel nach abwärts einen Weg bahnt, bis er einen Embryosack erreicht hat. Hier dringt er noch zwischen den beiden Synergiden hindurch zur Eizelle selbst heran. Pollenkorn und Pollenschlauch enthalten zwei Kerne, einen vegetativen, der bei der Befruchtung keine weitere Rolle spielt, und den Samenkern. Letzterer kommt in die Spitze des Pollenschlauchs zu liegen, wenn dieser zur Eizelle vorgedrungen ist; von hier tritt er durch die ganz erweichte Cellulosehaut hindurch in das Protoplasma des Eies ein, wobei ihm immer zwei zu einem Paar verbundene Centralkörperchen dicht vorangehen, deren Entdeckung dem französischen Forscher Guignard geglückt ist (Fig. 143). Bei seiner Wanderung trifft er bald den etwas umfangreicheren Eikern, an dessen Oberfläche ebenfalls ein Paar Centralkörperchen wahrzunehmen sind.
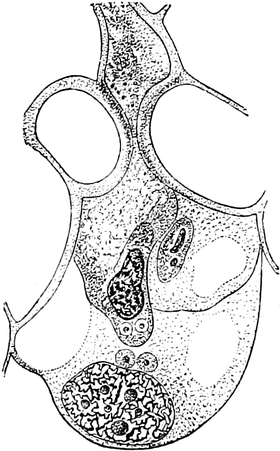
Fig. 143.
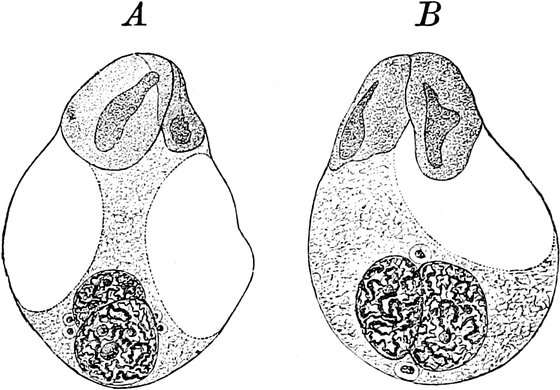
Fig. 144.
Fig. 143. Durchschnitt durch den Embryosack von Lilium Martagon. Nach GUIGNARD XV, Fig. 75.
Am Ende des Pollenschlauches, dessen erweichte Wand seinen Inhalt austreten lässt, sieht man den Samenkern mit seinen beiden Centralkörperchen. Der Eikern ist ebenfalls mit seinen beiden Centralkörperchen versehen. Rechts am Ende des Pollenschlauchs bemerkt man eine Synergide, welche sich zu zersetzen beginnt.
Fig. 144. Ei von Lilium Martagon. Nach GUIGNARD XVI, Fig. 80 u. 81.
A Kurze Zeit nach der Vereinigung von Ei- und Samenkern.
B Späteres Stadium. Die Verschmelzung der Centralkörperchen ist fast vollendet.
Die beiden Kerne (Fig. 144) copuliren darauf, ebenso die vier Centralkörperchen, und zwar die letzteren der Art, dass aus ihnen zwei neue Paare entstehen, von denen ein jedes aus je einem Element männlichen und weiblichen Ursprungs zusammengesetzt ist. Die neuen Paare liegen an entgegengesetzten Seiten des Keimkerns und werden alsbald zu den beiden Polkörperchen der ersten Kernspindel (Fig. 145).
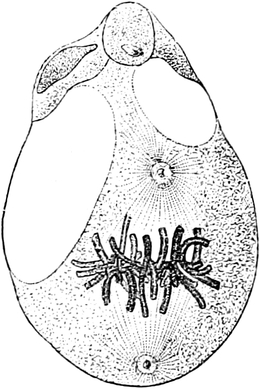
Fig. 145. Ei des Embryosacks von Lilium Martagon mit seinem Kern in Theilung.
Die Kernplatte besteht aus 24 Kernsegmenten. Nach G
UIGNARD
XVI, Fig. 83.
Wie bei den thierischen Geschlechtszellen wird auch bei der Bildung des Pollens und der Eizelle der Phanerogamen das Nucleïn und die Anzahl der aus ihm hervorgehenden Kernsegmente auf die Hälfte eines Normalkerns herabgesetzt. Während bei Lilium Martagon die gewöhnlichen Kerne bei ihrer Theilung 24 Kernsegmente entwickeln, die sich in zweimal 24 Tochtersegmente der Länge nach spalten, ist beim Ei- und Samenkern eine Reduction auf 12 Segmente herbeigeführt worden. Erst aus ihrer Vereinigung entsteht wieder ein Vollkern, die erste Theilspindel mit 24 Muttersegmenten, von denen 12 väterlicher, 12 mütterlicher Abstammung sind.
In Bezug auf die Centralkörperchen besteht bei Echinodermen und Phanerogamen ein wohl nebensächlicher Unterschied. Bei ersteren ist am Anfang das Centralkörperchen vom Ei- und vom Samenkern einfach und wird erst später durch Theilung verdoppelt, bei letzteren dagegen tritt es schon sehr frühzeitig im Pollenschlauch und in der Eizelle verdoppelt auf.
Wenn wir jetzt die auf den letzten Seiten (206–212) erhaltenen Resultate vergleichen, so lassen sich für den Befruchtungsprocess bei Thieren und phanerogamen Pflanzen folgende Fundamentalsätze aufstellen:
Bei der Befruchtung finden deutlich nachweisbare, morphologische Vorgänge statt. Bei diesen ist das Wichtige und Wesentliche die Vereinigung zweier Zellkerne, die von zwei verschiedenen Geschlechtszellen abstammen, eines Ei- und eines Samenkerns.
Beim Befruchtungsakt verschmelzen:
1) äquivalente Mengen männlicher und weiblicher färbbarer Kernsubstanz (Nucleïn),
2) die zwei Theilhälften eines männlichen Centralkörperchens mit den entsprechenden Theilhälften eines weiblichen Centralkörperchens, aus welcher Verschmelzung die zwei Polkörperchen der ersten Kerntheilungsfigur hervorgehen.
Sowohl die männliche, wie die weibliche färbbare Kernsubstanz sind ihrer Masse und der Zahl der Kernsegmente nach, aus denen sie entstanden sind, auf die Hälfte eines Normalkerns reducirt. Erst durch ihre Verschmelzung wird daher die volle Substanzmasse und die volle Anzahl der Segmente eines Normalkerns wieder hergestellt.
3) Die Befruchtung der Infusorien.
Ein ausserordentlich wichtiges Object für die allgemeine Befruchtungslehre sind die Infusorien, bei denen die geschlechtlichen Vorgänge zuerst durch die bahnbrechenden Untersuchungen von Balbiani und Bütschli (VII. 6) entdeckt und neuerdings durch die klassischen Arbeiten von Maupas (VII. 30) und Richard Hertwig (VII. 21) nach allen Richtungen hin noch weiter klargelegt worden sind.
Bekanntlich zeichnen sich die Infusorien vor anderen niederen Organismen durch die sehr interessante Eigenthümlichkeit aus, dass ihr Kernapparat sich in zwei physiologisch ungleichartige Kerne gesondert hat, in einen Hauptkern (Makronucleus) (Fig. 146 k) und in einen oder mehrere Neben- oder Geschlechtskerne (nk) (Mikronucleï). Bei guter Ernährung vermehren sich die Infusorien, die man zur Beobachtung in einem kleinen Wassertropfen züchten kann, durch gewöhnliche Quertheilung (Fig. 147), wobei Haupt- und Nebenkerne sich gleichzeitig in die Länge strecken und theilen.
Die ungeschlechtliche Vermehrung ist unter günstigen Bedingungen eine so lebhafte, dass ein einziges Individuum sich in der Zeit von sechs Tagen etwa 13 mal theilt und auf diese Weise ungefähr 7000–8000 Nachkommen den Ursprung giebt.
Es scheint nun namentlich aus Culturversuchen von Maupas und von Richard Hertwig hervorzugehen, dass eine Infusorienart sich nicht über längere Zeit hinaus allein durch Ernährung und Vermehrung durch Theilung erhalten kann. Die Individuen erleiden Veränderungen am Kernapparat, können den letzteren vollständig verlieren, theilen sich nicht mehr und gehen durch Altersveränderung oder, wie sich Maupas ausdrückt, durch senile Degeneration zu Grunde. Zur Erhaltung der Art scheint es durchaus nothwendig zu sein, dass nach bestimmten Zeitabschnitten sich zwei Individuen zu einem Geschlechtsakt verbinden. Ein solcher pflegt gewöhnlich bei Individuen, die einer Cultur angehören, ziemlich gleichzeitig stattzufinden, so dass man von zeitweise auftretenden Conjugationsepidemieen redet.
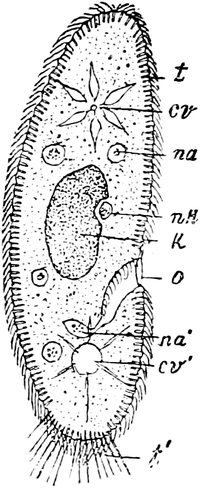
Fig. 146.
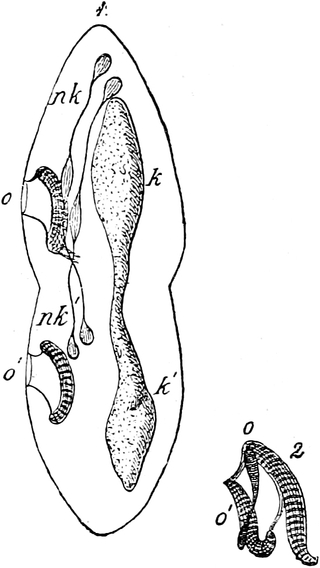
Fig. 147.
Fig. 146. Paramaecium caudatum (halbschematisch). R. HERTWIG, Zoologie Fig. 139.
k Kern, nk Nebenkern, o Mundöffnung (Cytostom), na′ Nahrungsvacuole in Bildung begriffen, na Nahrungsvacuole, cv contractile Vacuole im contrahirten, cv′ im ausgedehnten Zustand, t Trichocysten, bei t′ hervorgeschleudert.
Fig. 147. Paramaecium aurelia in Theilung, daneben in Fig. 2 die Art, wie auf einem früheren Stadium das Cytostom des hinteren Thieres durch Abschnürung vom vorderen entsteht. R. HERTWIG, Zool. Fig. 140.
k Hauptkern, nk Nebenkern, o Mundöffnung des vorderen Theilstücks, nk′ k′ o′ des hinteren Theilstücks.
Während einer Epidemie, die mehrere Tage währt, findet der Beobachter in einem Culturgefäss statt vereinzelter Infusorien fast nur Paarlinge vor. Von Leucophrys patula giebt Maupas an, dass die Conjugation etwa nach der 300sten Generation einzutreten pflegt, während sie bei Onychodromus schon nach der 140sten und bei Stylonichia nach der 120sten Generation stattfindet. Das Eintreten einer Conjugationsepidemie wird in einer Cultur befördert durch Abnahme der Nahrung, durch reichliche Ernährung dagegen hinausgeschoben, eventuell ganz verhindert, wobei dann die Individuen in Folge seniler Degeneration zu Grunde gehen.
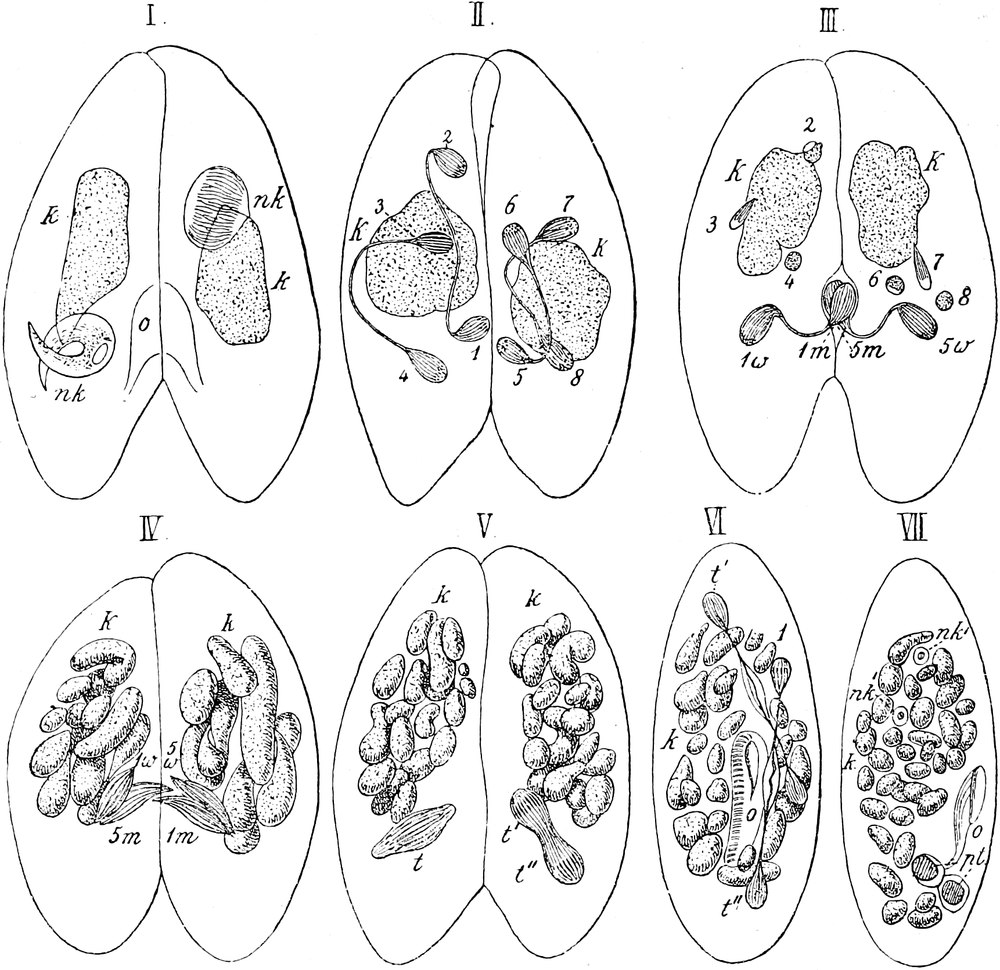
Fig. 148. Conjugation von Paramaecium.
R. H
ERTWIG
, Zoologie Fig. 141.
nk
Nebenkern,
k
Hauptkern der conjugirenden Thiere.
I
Der Nebenkern wandelt sich zur Spindel um, im linken Thier Sichelstadium, rechts Spindelstadium.
II
Zweite Theilung des Nebenkerns in die Hauptspindel (links mit
1
, rechts mit
5
bezeichnet) und die Nebenspindeln (links
2
,
3
,
4
, rechts
6
,
7
,
8
).
III
Die Nebenspindeln in Rückbildung (links
2
,
3
,
4
, rechts
6
,
7
,
8
), die Hauptspindeln theilen sich in männliche und weibliche Spindeln, links
1
in
1m
und
1w
, rechts
5
in
5m
und
5w
.
IV
Austausch der männlichen Spindeln nahezu vollendet (Befruchtung); dieselben stecken noch mit einem Ende in ihrem Mutterthier, mit dem andern Ende haben sie sich mit der weiblichen Spindel des zweiten Paarlings vereint.
1m
mit
5w
und
5m
mit
1w
. Hauptkern in Theilstücke ausgewachsen.
V
Die aus Vereinigung von männlichen und weiblichen Kernen entstandene primäre Theilspindel theilt sich in die secundären Theilspindeln
t′
und
t″
.
VI
und
VII
Nach Aufhebung der Conjugation. Die secundären Theilspindeln theilen sich in die Anlagen der neuen Nebenkerne (
nk′
) und die Anlagen des neuen Hauptkerns
pt
(Placenten). Der zerstückelte alte Hauptkern fängt an zu zerfallen. (Da Paramaecium caudatum für die Anfangsstadien, P. aurelia für die Endstadien leichter verständliche Verhältnisse bietet, wurde für
I
–
III
P. caudatum, für
IV
–
VII
P. aurelia gewählt. Der Unterschied beider Arten beruht darauf, dass P. caudatum 1 Nebenkern, P. aurelia deren 2 hat, dass bei letzterem der Kernzerfall schon auf Stadium
I
beginnt.)
Wenn wir nach diesen Vorbemerkungen den Befruchtungsprocess selbst näher in das Auge fassen, so nehmen wir bei den Infusorienpaarlingen folgende eigenartige und interessante Veränderungen wahr, die sich über einen Zeitraum von mehreren Tagen ausdehnen. Zur Grundlage der Darstellung diene Paramaecium caudatum, welches insofern, als es nur einen Hauptkern und einen einzigen Nebenkern besitzt, einfachere Verhältnisse als die meisten anderen Arten darbietet (Fig. 148).
Wenn die Neigung zur Copulation eintritt, legen sich „zwei Paramäcien, zuerst mit ihren Vorderenden, später mit ihrer ganzen ventralen Seite aneinander, so dass Mundöffnung gegen Mundöffnung steht“ (Fig. 148 I o). In der Nachbarschaft der letzteren bildet sich, wenn die Copulation schon eine Zeit lang gedauert hat, eine feste Verwachsung in einem kleinen Bezirk aus. Mittlerweile hat schon der Kernapparat, der Hauptkern sowohl, als auch der Nebenkern, tiefgreifende Veränderungen erfahren.
Der Hauptkern vergrössert sich etwas, erhält zuerst eine unregelmässige, mit Höckern und Einbuchtungen versehene Oberfläche (Fig. 148 II–IV k), die Höcker wachsen zu längeren Fortsätzen aus, die sich später abschnüren und allmählich noch weiter in kleine Stücke zerlegt werden (V, VI k). Der ganze Hauptkern zerfällt auf diese Weise in viele kleine Fragmente, die sich überall im Infusorienkörper vertheilen (VII) und deren Schicksal, wenn wir den Vorgängen gleich weit vorauseilen, schliesslich darin besteht, dass sie aufgelöst und wie Nahrungspartikel resorbirt werden. Mit einem Worte: der Hauptkern geht während und nach der Conjugation als ein Organtheil, der seine Aufgabe ausgespielt hat, vollständig zu Grunde.
Während der regressiven Metamorphose des Hauptkerns macht der kleine Nebenkern hochbedeutsame und stets in gleicherweise wiederkehrende Veränderungen durch, die sich den Reife- und Befruchtungserscheinungen thierischer Eier vergleichen lassen. Er vergrössert sich durch Aufnahme von Flüssigkeit aus dem Protoplasma, sein Inhalt nimmt eine faserige Beschaffenheit an und wandelt sich in eine kleine Spindel um (Fig. 148 I nk). Die Spindel theilt sich, ihre Hälften gehen bald wieder in zwei Spindeln über, die sich einschnüren und theilen, so dass schliesslich neben dem in Umwandlung begriffenen Hauptkern vier aus dem Nebenkern ableitbare Spindeln vorhanden sind (Fig. 148 II, 1–4, 5–8).
Von den vier Spindeln gehen im Laufe der weiteren Ereignisse drei, die Nebenspindeln regelmässig zu Grunde (III, 2, 3, 4, 6, 7, 8). Sie wandeln sich in kleine Kügelchen um, die schliesslich zwischen den Fragmenten des Hauptkerns, deren Schicksal sie theilen, nicht mehr herauszuerkennen sind. Sie erinnern an die Bildung der Polzellen bei der Reife der thierischen Eier und sind mit ihnen daher auch von manchen Forschern verglichen worden.
Die vierte oder Hauptspindel allein (II, 1 u. 5) bleibt erhalten, sie vermittelt den Befruchtungsprocess und dient dann zur Neuerzeugung des ganzen Kernapparates im Infusorienkörper. Welche von den vier aus dem ursprünglichen Nebenkern abstammenden Spindeln zur Hauptspindel wird, hängt nach Maupas einzig und allein von ihrer zufälligen Lage ab. In ihrem Bau gleichen sich alle vier vollkommen. Nur diejenige wird zur Hauptspindel, welche sich, wenn die oben erwähnte Verwachsungsbrücke entstanden ist, in der grössten Nähe derselben befindet (II, 1 u. 5). Sie stellt sich hier senkrecht zur Körperfläche ein, streckt sich in die Länge und theilt sich noch einmal in zwei Hälften (III, 1w u. 1m, 5w u. 5m).
Von den beiden Theilhälften enthält eine jede wahrscheinlich nur etwa halb so viel Spindelfasern und halb so viel chromatische Elemente, wie eine der früheren Spindeln. Nach diesen Beobachtungen von Richard Hertwig hat somit bei der Theilung der Hauptspindel eine Reduction der Spindelfasern auf die Hälfte stattgefunden, es ist dadurch ein gleiches Verhältniss wie bei den Kernen der thierischen und pflanzlichen Geschlechtszellen geschaffen worden. Die so gekennzeichneten Kerne spielen denn auch dieselbe Rolle wie Ei- und Samenkern, und werden daher als männlicher und weiblicher Kern oder als Wanderkern und stationärer Kern voneinander unterschieden.
Welcher von den beiden Kernen Wanderkern oder stationärer Kern ist, lässt sich an der Structur und stofflichen Zusammensetzung wieder nicht erkennen, sondern hängt einzig und allein von der Lage und der dadurch bedingten Verwendung beim Befruchtungsprocess ab. So werden denn die der Verwachsungsstelle zunächst gelegenen Theilhälften (III, 1 m u. 5 m) zu den Wanderkernen; sie werden zwischen beiden copulirten Thieren „ausgetauscht, indem sie sich auf der zu diesem Zweck gebildeten Protoplasmabrücke aneinander vorbeischieben. Während des Austausches besitzen die männlichen Wanderkerne Spindelstructur (IV, 5 m, 1 m). Nach dem Austausch verschmilzt ein jeder mit dem ebenfalls spindeligen, stationären oder weiblichen Kern (IV, 1 w, 5 w), so dass nun jedes Thier, abgesehen von den Fragmenten des Hauptkerns und den Nebenspindeln, welche dem allmählichen Untergang verfallen sind, nur eine Spindel, die Theilspindel besitzt (V, t).
Die Uebereinstimmung mit den Befruchtungsvorgängen der Thiere und Phanerogamen ist eine frappante. Wie bei diesen durch Vereinigung von Ei- und Samenkern der Keimkern gebildet wird, so hier durch Vereinigung von stationärem und von wanderndem Kern die Theilspindel. Dieselbe dient zum Ersatz des alten, in Auflösung begriffenen Kernapparats. Sie nimmt an Grösse beträchtlich zu (Fig. 148 V t). Die chromatischen Elemente ordnen sich in ihrer Mitte zu einer Platte an, theilen sich und weichen nach entgegengesetzten Enden fast bis an die Pole der Spindel zur Bildung der Tochterplatten auseinander (V rechts t′ t″). Die beiden Theilhälften bleiben noch längere Zeit durch einen Verbindungsfaden in Zusammenhang. Sie wandeln sich dann meist auf Umwegen in Haupt- und Nebenkern um; bei Paramaecium aurelia (Fig. 148 VI) z. B. wiederholen die aus der primären Theilspindel hervorgegangenen Tochterspindeln (t′ u. t″) noch einmal den Theilungsact und liefern so vier Kerne (VI), von denen zwei zu Nebenkernen (nk′, nk′) werden, während die zwei andern zum Hauptkern verschmelzen (pt). So führt bei den Infusorien „die Befruchtung zu einer vollkommenen Neugestaltung des Kernapparats und damit auch zu einer Neuorganisation des Infusors“ (Richard Hertwig).
Kürzere oder längere Zeit nach dem Austausch der Wanderkerne trennen sich die Paarlinge voneinander (Fig. 148 VI und VII). Bei den getrennten Individuen nimmt die Resorption der unbrauchbaren Kerntheile und ihr definitiver Ersatz durch Neugestaltung noch einen längeren Zeitraum für sich in Anspruch. Die so „verjüngten Individuen“ haben darauf wieder die Fähigkeit erlangt, sich durch Theilungen in kurzer Zeit ausserordentlich zu vermehren, bis wieder die Nothwendigkeit für eine neue „Conjugationsepidemie“ eintritt.
Die Befruchtungsperiode bedeutet im Leben der Infusorien zugleich einen länger dauernden Stillstand in ihrer Vermehrung, wie Maupas an einem Beispiel treffend gezeigt hat. Bei Onychodromus grandis dauert dieselbe vom Beginn der Conjugation bis zur ersten Theilung 6½ Tag bei einer Temperatur von 17 bis 18 Grad. Während dieser Zeit hätte dasselbe Individuum, wenn nicht conjugirt, sich bei guter Ernährung 13mal theilen und folglich 7000 bis 8000 Nachkommen hervorbringen können.
Bei den meisten Infusorien, wie in den hier beschriebenen Fällen, verhalten sich die copulirenden Individuen einander gleichwerthig, jedes ist in Bezug auf das andere sowohl männlich als weiblich, sowohl befruchtend als empfangend. Festsitzende Formen der Infusorien, wie die Vorticellen etc., zeigen indessen eine interessante Abweichung vom ursprünglichen Verhalten.
Als Beispiel diene Epistylis umbellaria (Fig. 149). Beim Herannahen einer Conjugationsperiode theilen sich manche Individuen der Vorticellencolonie mehrmals rasch hintereinander und liefern so eine Nachkommenschaft (r), die an Grösse hinter dem Mutterorganismus weit zurückbleibt. Andere Individuen des Stöckchens bleiben ungetheilt und von normaler Grösse. Man unterscheidet beide voneinander, die ersteren als Mikrogameten, die letzteren als Makrogameten. Beide sind jetzt in einen geschlechtlichen Gegensatz zu einander getreten.
Die Mikrogameten lösen sich von ihren Stielen ab, schwimmen im Wasser umher und setzen sich nach einiger Zeit an eine Makrogamete an, um mit ihr zu copuliren (Fig. 149 k). An dem Kernapparat der Paarlinge gehen hierauf ähnliche Veränderungen vor sich, wie sie für Paramaecium ausführlicher geschildert wurden. Auch hier werden die Wanderkerne ausgetauscht. Dann aber entwickelt sich nur die Makrogamete weiter, indem Wanderkern und stationärer Kern zur primären Theilspindel verschmelzen, während sie in der Mikrogamete gleichsam wie gelähmt sind und anstatt zu verschmelzen und sich weiter zu entwickeln, gleich den Fragmenten des Hauptkerns und den Nebenspindeln, rückgebildet und aufgelöst werden.
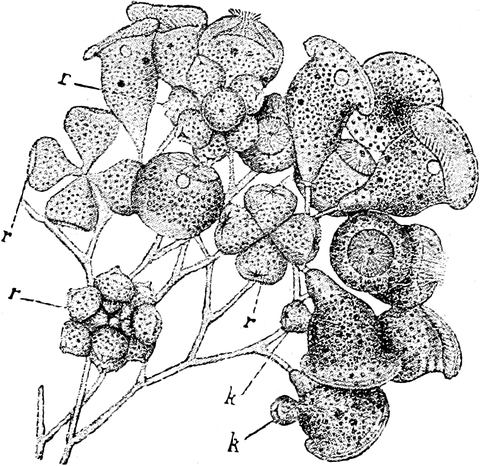
Fig. 149. Epistylis umbellaria
nach G
RAEFF
. Aus R. H
ERTWIG
Fig. 142.
Theil einer in „knospenförmiger Conjugation“ begriffenen Colonie.
r
Die durch Theilung entstandenen Mikrosporen.
k
Mikrogameten in Conjugation mit den Makrogameten.
In Folge dessen verliert die Mikrogamete ihre selbständige Individualität und wird allmählich in die Makrogamete mit aufgenommen, zu deren Vergrösserung sie beiträgt.
So hat sich in Folge der festsitzenden Lebensweise bei den Vorticellen ein eigenthümlicher Geschlechtsdimorphismus ausgebildet; derselbe hat den Untergang des kleineren der copulirenden Individuen zur Folge, nachdem es gewissermaassen als männliches Element die Makrogamete befruchtet hat. Doch trifft der Vergleich mit Ei- und Samenfaden nur theilweise zu, da ja auch bei den Vorticellen wie bei den Paramäcien die Befruchtung mit einem wechselseitigen Austausch von Kernmaterial beginnt und nur im weiteren Verlauf einseitig zu einem wirksamen Resultat führt.
4) Die verschiedene Form der Geschlechtszellen, die Aequivalenz der beim Zeugungsakt betheiligten Stoffe und die Begriffe „männliche und weibliche Geschlechtszellen“.
Nachdem an verschiedenen Beispielen nachgewiesen ist, dass im Verlauf des Befruchtungsprocesses und namentlich im Verhalten der Kerne eine principielle Uebereinstimmung zwischen Thieren, Pflanzen und Protozoen besteht, soll jetzt auch ein Unterschied, welcher zwischen den beiden zum Befruchtungsakt sich vereinigenden Zellen bei den meisten Organismen wahrgenommen wird, schärfer in das Auge gefasst und seine Bedeutung genauer festgestellt werden. — Der Unterschied betrifft die ungleiche Grösse und Form der weiblichen und männlichen Keimzellen. Weiblich nennt man diejenige Zelle, welche grösser, unbeweglich und daher die empfangende ist; im Gegensatz zu ihr ist die männliche Zelle viel kleiner, oft verschwindend klein; entweder ist sie beweglich, so dass sie sich activ der Eizelle durch amöboide oder Geisselbewegung nähert und die Befruchtung ausübt, oder sie wird wegen ihrer Kleinheit passiv durch Wasser oder Luft zur Eizelle hingeführt.
Was für eine Bedeutung hat dieser Unterschied? Hängt er mit dem Wesen der Befruchtung selbst zusammen oder ist er durch Momente nebensächlicher und sekundärer Art hervorgerufen worden? Es ist von principieller Wichtigkeit für die Entscheidung dieser Frage, dass wir genau feststellen, auf welche Stoffe und Formtheile sich die Verschiedenheit der beiderlei Geschlechtszellen erstreckt.
Jede Zelle besteht aus Protoplasma und Kernsubstanzen. Von diesen ist das Protoplasma, wie der Augenschein sofort lehrt, zuweilen in ausserordentlich ungleicher Menge in den beiderlei Geschlechtszellen vorhanden; die Samenfäden besitzen oft noch weniger als den 100000sten Theil vom Protoplasma des Eies. So beträgt nach einer Schätzung von Thüret das Ei von Fucus an Masse soviel, wie 30–60000 Samenfäden derselben Art. Zwischen thierischen Geschlechtsproducten aber sind die Unterschiede gewöhnlich noch unendlich viel grössere, besonders in den Fällen, wo die Eizellen mit Reservestoffen, wie Fettkügelchen, Dotterplättchen etc. reichlich beladen sind. Bei typisch ausgebildeten Samenfäden kann die Anwesenheit von Protoplasma überhaupt in Zweifel gezogen werden; denn der an das Mittelstück sich ansetzende Schwanzanhang ist contractile Substanz, ist wie die Muskelfibrille ein Differenzirungsproduct des Protoplasma der Samenzelle. Unreifen Samenfäden sitzt das Protoplasma noch in Form grösserer und kleinerer Tropfen an, die bei der vollständigen Reife aufgebraucht, eventuell auch abgestreift werden.
Das Gegenstück zum Protoplasma bilden in ihrem Verhalten die Kernsubstanzen. Mögen Ei und Samenfaden an Grösse auch noch so sehr voneinander abweichen, so enthalten sie doch stets äquivalente Mengen von wirksamer Kernsubstanz. Wenn die Richtigkeit obiger Behauptung auch nicht direct aus einer einfachen Vergleichung der beiden Geschlechtszellen hervorgeht, so lässt sie sich doch aus dem Verlauf des Befruchtungsprocesses und aus der Bildungsgeschichte der reifen Ei- und Samenzelle erweisen. Denn Ei- und Samenkern enthalten die gleiche Masse von Nucleïn und sind beim Reifeprocess aus einer gleich grossen Zahl von Kernsegmenten gebildet worden. Der Samenkern von Ascaris megalocephala bivalens zum Beispiel entsteht wie der Eikern aus zwei Kernsegmenten der Mutterzelle; jeder von ihnen trägt somit bei der Befruchtung zu gleichen Theilen zur Bildung des Keimkerns bei (Fig. 142 II). Ebenso liefern die beiden Kerne gleichwerthige Mengen von Polsubstanz, das männliche und das weibliche Centralkörperchen, welche beiden sich in der auf Seite 208 beschriebenen Weise beim Befruchtungsprocess betheiligen (Fig. 141).
Unserer Beweisführung könnte man entgegenhalten, dass die Kerntheile von Ei- und Samenzelle vor ihrer Vereinigung gewöhnlich ein ungleiches Aussehen und eine bald mehr, bald minder auffällige Verschiedenheit in ihrer Grösse darbieten. Das erklärt sich aber in einfacher Weise daraus, dass der wirksamen Kernsubstanz unwirksame, flüssige Substanz bald in grösserer, bald in geringerer Menge beigemischt sein kann. Der sehr kleine Kopf des Samenfadens besteht aus ziemlich compactem und daher stark färbbarem Nucleïn. In dem viel grösseren Eikern ist die äquivalente Menge von Nucleïn mit viel Kernsaft durchtränkt und in dem Saftraum in feinen Körnchen und Fäden vertheilt, so dass sich der Eikern als Ganzes nur sehr wenig färbt und wenig Consistenz besitzt.
Der Unterschied in Grösse und Consistenz zwischen Ei- und Samenkern gleicht sich beim Ablauf der inneren Befruchtungserscheinungen gewöhnlich bald aus, denn der anfangs kleine Samenkern schwillt durch Aufnahme von Flüssigkeit aus dem Dotter rasch zu derselben Grösse wie der Eikern an, während er zu diesem hinwandert (Fig. 142 II), wie die meisten Würmer, Mollusken, Wirbelthiere lehren. In selteneren Fällen freilich sind die beiden Kerne, wenn sie sich untereinander verbinden, verschieden gross, wie bei den Eiern der Seeigel (Fig. 141); dann hat der Samenkern eben eine geringere Menge von Saft als gewöhnlich in sich aufgenommen und besteht aus einer dichtern Substanz, so dass wir trotz der Grössenverschiedenheit eine Aequivalenz der festen, wirksamen Bestandtheile annehmen dürfen.
An geeigneten Objecten lässt sich beweisen, dass die ungleiche Grösse von Ei- und Samenkern wesentlich mit bedingt wird durch den Zeitpunkt, in welchem die Eizelle befruchtet wird, ob vor, während oder nach der Bildung der Polzellen. Wenn zum Beispiel zum Ei von Asteracanthion Same während der Entwicklung der Polzellen zugesetzt wird, so muss der Samenkern bis zum Eintritt der Verschmelzung längere Zeit im Dotter verweilen und schwillt mittlerweile durch Aufnahme von Kernsaft zu derselben Grösse wie der Eikern an, welcher sich nach der Abschnürung der zweiten Polzelle bildet. Wenn dagegen die Befruchtung erst später erfolgt zu einer Zeit, wo die Eizelle schon mit Polzellen und Eikern versehen ist, so verweilt der Samenkern als selbständiger Körper nur wenige Minuten im Dotter und geht gleich nach seinem Eindringen schon die Verschmelzung mit dem Eikern ein. Er bleibt dann klein, da er sich in diesem Falle nicht in demselben Maasse wie sonst mit Kernsaft hat durchtränken können.
Wir können somit den wichtigen Satz als bewiesen ansehen, dass die beiden Geschlechtszellen trotz ihres oft ausserordentlich verschiedenen Aussehens und trotz ihres so ungleichen Gehaltes an Protoplasma doch genau äquivalente Mengen von Kernsubstanz (Nucleïn in einer bestimmten Anzahl von Kernsegmenten, Paranucleïn im Ovocentrum und Spermacentrum) zum Befruchtungsprocess liefern und insofern einander genau gleichwerthig sind.
An diesen Satz schliesse ich gleich die These an: die Kernsubstanzen, die in äquivalenten Mengen von zwei verschiedenen Individuen abstammen, sind überhaupt nur die wirksamen Stoffe, auf deren Vereinigung es beim Befruchtungsakt ankommt; es sind die eigentlichen Befruchtungsstoffe. Alle anderen Substanzen (Protoplasma, Dotter, Kernsaft etc.) haben mit der Befruchtung als solcher nichts zu thun.
Die These lässt sich durch zwei wichtige Verhältnisse unterstützen.
Einmal lassen sich zu ihren Gunsten die complicirten Vorbereitungs- und Reifeprocesse verwerthen, welche die Geschlechtszellen durchmachen müssen. Wie aus der auf Seite 189–192 gegebenen Darstellung hervorgeht, soll durch sie wohl hauptsächlich nur das Eine erreicht werden, dass durch die Befruchtung keine Summirung der Kernsubstanzen eintritt, sondern das für die betreffende Thier- und Pflanzenart bestimmte Maass von Kernsubstanz eingehalten wird.
Zweitens sprechen für die These die Befruchtungsvorgänge bei den Infusorien. Hier sind es, wie Maupas und Richard Hertwig in übereinstimmender Weise hervorheben, gleichwerthige Individuen, welche sich nur vorübergehend aneinander legen, um Theilhälften gleichwerthiger Kerne miteinander auszutauschen. Mit dem Austausch der Wanderkerne ist die Befruchtung beendet. Dann trennen sich die Paarlinge wieder. Das Endergebnis der verwickelten Vorgänge besteht hier offenbar darin, dass, wenn Wanderkern und stationärer Kern verschmolzen sind, der Kernapparat eines jeden befruchteten Individuums aus Kernsubstanz von doppelter Herkunft zusammengesetzt ist.
Wenn bei der Befruchtung die Kerne die wirksame Substanz bergen, dann liegt die Frage nahe, ob die Kernsubstanz des Samenfadens etwas Anderes ist als die Kernsubstanz der Eizelle. Die Frage ist in sehr verschiedenem Sinne beantwortet worden; namentlich in früheren Jahrzehnten hat die Ansicht vorgeherrscht, dass durch den Samenfaden, wie Sachs sich ausdrückt, in die Eizelle doch eine Substanz hineingetragen werde, die in ihr noch nicht enthalten sei. Namentlich hat eine Ansicht Beifall gefunden, welche man als die Lehre vom Hermaphroditismus der Kerne und als die Ersatztheorie bezeichnen kann.
Viele Forscher lassen die Körperzellen hermaphrodite Kerne, d. h. Kerne besitzen, welche sowohl männliche als weibliche Eigenschaften haben. Unreife Ei- und Samenzellen — so lautet zum Beispiel die am klarsten ausgeführte Hypothese von van Beneden — sind hermaphrodit; sie gewinnen ihren Geschlechtscharakter erst dadurch, dass sich die Eier der männlichen und die Samenzellen der weiblichen Bestandtheile ihres hermaphrodit angelegten Kernapparats entledigen. Vom Ei werden die männlichen Bestandtheile seines Kerns in den Kernsegmenten der Polzellen entfernt. Bei den Samenzellen geschieht das Umgekehrte durch einen entsprechenden Process. Ei- und Samenkern sind dadurch Halbkerne (Pronucleï) mit einem entgegengesetzten Sexualcharakter geworden.
Von diesem Gesichtspunkt aus betrachtet, besteht das Wesen der Befruchtung in einem Ersatz der aus dem Ei ausgestossenen, männlichen Elemente durch gleich viel neue männliche Elemente, welche durch den Samenfaden wieder eingeführt werden.
Die Lehre vom Hermaphroditismus des Kerns und die mit ihr zusammenhängende Ersatztheorie lässt sich bei genauerer Prüfung nicht aufrecht erhalten. Denn sie hat ihre empirische Grundlage, auf welcher sie aufgebaut war, durch den auf Seite 191 geführten Nachweis verloren, dass die Polzellen morphologisch nichts Anderes sind als rudimentär gewordene Eizellen. Es ergiebt sich dies aus einem Vergleich der Ei- und Samenbildung bei den Nematoden. Daher können die in den Polzellen aus dem Ei entfernten Kernsegmente auch nicht die ausgestossenen männlichen Bestandtheile des Keimbläschens sein, wie es durch die Ersatztheorie behauptet wurde.
Hiervon abgesehen, lässt sich mit den uns zu Gebote stehenden Untersuchungsmitteln auch nicht die geringste Verschiedenheit zwischen den Kernsubstanzen der männlichen und der weiblichen Zelle aufdecken. Nucleïn und Polsubstanz sind nicht nur ihrer Masse nach, sondern auch stofflich einander gleich. Es giebt keine specifisch weiblichen und keine specifisch männlichen Befruchtungsstoffe. Die beim Befruchtungsprocess zusammentreffenden Kernsubstanzen sind nur insofern verschieden, als sie von zwei verschiedenen Individuen abstammen.
Wenn demnach ein geschlechtlicher Gegensatz im Sinne der Ersatztheorie zwischen Eikern und Samenkern in Abrede gestellt werden muss, was für eine Bedeutung haben dann noch die Begriffe männlich und weiblich? Was verstehen wir unter dem Ausdruck männliche und weibliche Geschlechtszellen, männliche und weibliche Kerne?
Die Ausdrücke treffen nicht das eigentliche Wesen der Befruchtung und bezeichnen keinen im Wesen der Zeugung begründeten Gegensatz, sie beziehen sich vielmehr nur auf secundär entstandene Verschiedenheiten untergeordneter Art, welche sich zwischen den zur Befruchtung verbundenen Individuen, zwischen den Geschlechtszellen und ihren Kernen ausgebildet haben und als secundäre Sexualcharaktere zusammengefasst werden können. Denn sagen wir es gleich, was später noch genauer zu erweisen ist: Die Ausbildung zweier verschiedener Geschlechter ist nicht die Ursache der geschlechtlichen Zeugung, wie bei oberflächlicher Beurtheilung zunächst angenommen wird; das ursächliche Verhältniss ist ein umgekehrtes. Alle Geschlechtsdifferenzen, wenn wir sie bis zu ihren Wurzeln zurückverfolgen, sind entstanden, weil die Verbindung zweier Individuen einer Art, die ursprünglich gleichartig und daher geschlechtslos sind, für die Erhaltung des Lebensprocesses Vortheile darbietet; ohne Ausnahme dienen sie nur dem einen Zweck, überhaupt die Vereinigung zweier Zellen zu ermöglichen; nur deswegen haben sich die Gegensätze, welche man als weiblich und männlich bezeichnet, herausgebildet.
Die von Weismann, Strasburger, Maupas, Richard Hertwig und mir entwickelte Ansicht lässt sich in folgender Weise näher ausführen: Bei der Befruchtung kommen zwei Momente in Betracht, die miteinander concurriren und in einem Gegensatz zu einander stehen. Erstens ist es von Nutzen, wenn die Kernsubstanzen zweier Zellen gemischt werden; sie müssen daher in der Lage sein, sich aufzusuchen und zu verbinden. Zweitens aber ist die Befruchtung auch der Ausgangspunkt für einen neuen Entwicklungsprocess und einen neuen Cyclus von Zelltheilungen; insofern ist es nicht minder von Nutzen, wenn gleich von Anfang an viel entwicklungsfähige Substanz vorhanden ist, welche nicht erst auf dem zeitraubenden Umweg der Ernährung herbeigeschafft zu werden braucht.
Um dem ersten Zweck zu genügen, müssen die Zellen beweglich und daher activ sein; für den zweiten Zweck dagegen müssen sie entwicklungsfähige Substanz ansammeln, sie müssen daher an Grösse zunehmen, was naturgemäss eine Beeinträchtigung ihrer Beweglichkeit zur Folge hat.
So concurriren zwei Momente mit einander, von denen das eine die Zelle beweglich und activ, das andere dagegen unbeweglich und passiv zu machen sucht. Die Natur hat beide Zwecke erreicht, indem sie Eigenschaften, die ihrer Natur nach in einem Körper unvereinbar, weil gegensätzlich zu einander sind, nach dem Princip der Arbeitstheilung auf die beiden zum Befruchtungsakt verbundenen Zellen vertheilt hat. Sie hat die eine Zelle activ und befruchtend, das heisst männlich, die andere Zelle dagegen passiv und empfangend, das heisst weiblich, gemacht. Die weibliche Zelle oder das Ei hat die Aufgabe übernommen, für die Substanzen zu sorgen, welche zur Ernährung und Vermehrung des Zellprotoplasma bei einem raschen Ablauf der Entwicklungsprocesse erforderlich sind. Sie hat daher während ihrer Entwicklung im Eierstock Dottermaterial aufgespeichert und ist dementsprechend gross und unbeweglich geworden. Der männlichen Zelle dagegen ist die zweite Aufgabe zugefallen, die Vereinigung mit der ruhenden Eizelle herbeizuführen. Sie hat sich daher zum Zwecke der Fortbewegung in einen contractilen Samenfaden umgebildet und hat sich, je vollkommener sie ihrer Aufgabe angepasst ist, um so mehr aller Substanzen entledigt, welche, wie z. B. das Dottermaterial oder selbst das Protoplasma, diesem Hauptzweck hinderlich sind. Dabei hat sie zugleich auch eine Form angenommen, welche für den Durchtritt durch die Hüllen, mit welchen sich das Ei zum Schutz umgiebt, und für das Einbohren in den Dotter die zweckmässigste ist.
Von den so geschlechtlich differenzirten Zellelementen können wir die Ausdrücke „männlich und weiblich“ auf die in ihnen enthaltenen Kerne übertragen, auch wenn dieselben an Masse und Qualität ihrer Substanz einander äquivalent sind. Nur dürfen wir unter der Bezeichnung männlicher und weiblicher Kern nichts Anderes verstehen als einen Kern, der von einer männlichen oder weiblichen Zelle abstammt. Auch bei den Infusorien kann der Wanderkern als männlich, der stationäre Kern als weiblich im Sinne der früher gegebenen Definition bezeichnet werden, insofern der erstere den letzteren aufsucht.
Der Gegensatz, der sich zwischen den Geschlechtszellen durch Arbeitstheilung und Anpassung an entgegengesetzte Aufgaben entwickelt hat, wiederholt sich im ganzen Organismenreich in allen den Fällen, wo die Individuen, in welchen sich die männlichen und weiblichen Geschlechtszellen entwickeln, durch Sexualcharaktere unterschieden sind. In allen das Geschlecht betreffenden Einrichtungen wird ein und dasselbe Thema variirt: einmal Vorkehrungen zu treffen, durch welche das Zusammentreffen der Geschlechtszellen ermöglicht wird, und zweitens für Einrichtungen zu sorgen, durch welche das Ei ernährt und geborgen wird. Das eine nennen wir männliche, das andere weibliche Organisation, männliche und weibliche Sexualcharaktere. Alle diese Verhältnisse sind secundärer Art und haben mit dem eigentlichen Wesen des Befruchtungsvorganges, der ein reines Zellenphänomen ist, nichts zu thun.
Die Befruchtung ist eine Vereinigung zweier Zellen und insbesondere eine Verschmelzung zweier äquivalenter Kernsubstanzen, die von zwei Zellen abstammen, aber sie ist nicht ein Ausgleich sexueller Gegensätze, da diese nur auf Einrichtungen untergeordneter Art beruhen.
Die Richtigkeit obigen Satzes lässt sich noch besser, als es bisher geschehen ist, beweisen, wenn wir die Zeugungsprocesse im ganzen Organismenreich vergleichen und dabei festzustellen versuchen, wie sich allmählich Verschiedenheiten zwischen den zur Befruchtung verbundenen Zellen entwickelt haben. Das Reich der Einzelligen und der Pflanzen liefert uns zahllose, lehrreiche Beispiele von den Ur- und Grundformen der geschlechtlichen Zeugung und von der Entstehung der Geschlechtsdifferenzen im Thier- und Pflanzenreich.
5) Die Ur- und Grundformen der geschlechtlichen Zeugung und das erste Hervortreten von Geschlechtsdifferenzen.
Das Studium der niedersten Organismen, der Noctilucen, Diatomeen, Gregarinen, Conjugaten und anderer niederer Algen lehrt, dass bei vielen von ihnen in regelmässigen Cyclen Verschmelzungen von zwei Individuen eintreten, die wir nicht anders als einen Befruchtungsprocess deuten können.
Bei den Noctilucen beginnt die Conjugation damit, dass zwei gleich grosse, in Nichts voneinander unterschiedene Individuen sich mit ihren Mundöffnungen zusammenlegen und von hier aus unter Auflösung der Zellmembran verschmelzen. Es bildet sich zwischen ihnen eine immer breiter werdende Verbindungsbrücke aus, nach welcher die Protoplasmamassen von allen Seiten zusammenströmen, bis aus beiden Individuen eine grosse Zellblase entstanden ist. Die beiden Kerne, ein jeder von einem Centralkörperchen begleitet, wandern aufeinander zu und legen sich aneinander, verschmelzen aber nicht, wie uns die Untersuchungen von Ishikawa berichten (VII. 25). Nach einiger Zeit theilt sich das conjugirte Noctilucenpaar wieder durch Auftreten einer Scheidewand in zwei Zellen. Bei Beginn dieser Theilung strecken sich auch die beiden zu einem Paar verbundenen Kerne, werden in ihrer Mitte eingeschnürt und halbirt und weichen bei ihrer Trennung so auseinander, dass die Hälften von jedem Kern in je eines der beiden Theilstücke der Noctiluca zu liegen kommen. So gehen aus dem Copulationsprocess wieder zwei Individuen hervor, von denen jedes Kernsubstanz doppelten Ursprungs besitzt. Auf die Befruchtung folgt dann nach kürzerer oder längerer Zeit lebhafte Vermehrung durch Knospung und Schwärmerbildung.
Besonders wichtig für das Studium der Grundformen der Befruchtung ist die Ordnung der Conjugaten (VII. 11), die wieder in die drei Familien der Desmidiaceen, Mesocarpeen und Zygnemaceen zerfällt.
Bei zwei Arten von Desmidiaceen, bei Closterium und Cosmarium, hat Klebahn (VII. 27) auch feinere Details des Befruchtungsvorgangs aufgedeckt.
Zwei Closteriumzellen, welche sich in ihrer Form gekrümmten Spindeln vergleichen lassen, legen sich der Länge nach aneinander, wobei sie durch eine Gallertabscheidung zusammengehalten werden, und bilden dann in ihrer Mitte eine Ausstülpung. Beide Ausstülpungen berühren sich in grösserer Ausdehnung und verschmelzen unter Auflösung der sie trennenden Scheidewand zu einem gemeinsamen Copulationskanal. In diesem sammelt sich allmählich das gesammte Protoplasma der beiden conjugirten Closteriumzellen an, indem es sich von der alten Zellmembran ablöst, und verschmilzt dabei zu einem einheitlichen, kugligen Körper, der sich zuletzt noch mit einer eigenen Membran umgiebt.
Die so durch Verschmelzung zweier gleichartiger Individuen entstandene Copulationsspore oder Zygote macht ein mehrere Monate dauerndes Ruhestadium durch (Fig. 150). Sie besitzt zwei Kerne, die von den gepaarten Zellen abstammen, aber sich während des ganzen Ruhestadiums getrennt erhalten. Erst mit dem Wiederbeginn einer neuen Vegetationsperiode im Frühjahr rücken die Kerne dicht zusammen und verschmelzen vollständig miteinander zum Keimkern.
Zu dieser Zeit schlüpft die Zygote, von einer feinen Haut umgeben, aus der alten Cellulosehülle aus, ihr Keimkern wandelt sich in eine grosse Spindel von etwas ungewöhnlichem Aussehen um (Fig. 151 I). Aus ihrer Theilung bilden sich darauf (Fig. 151 II) zwei Spindelhälften, die aber nicht in das Stadium des ruhenden Kerns eintreten, sondern sich sofort noch zu einer zweiten Theilung anschicken (Fig. 151 III). So entstehen aus dem Keimkern durch zwei, ohne Pause aufeinander folgende Theilungen vier Kerne (Fig. 151 IV).
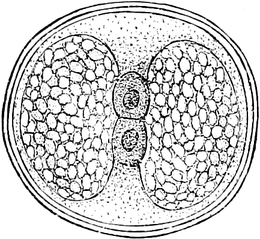
Fig. 150.
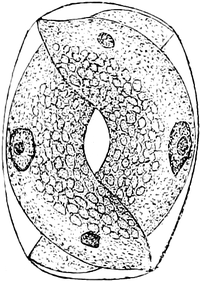
Fig. 152.
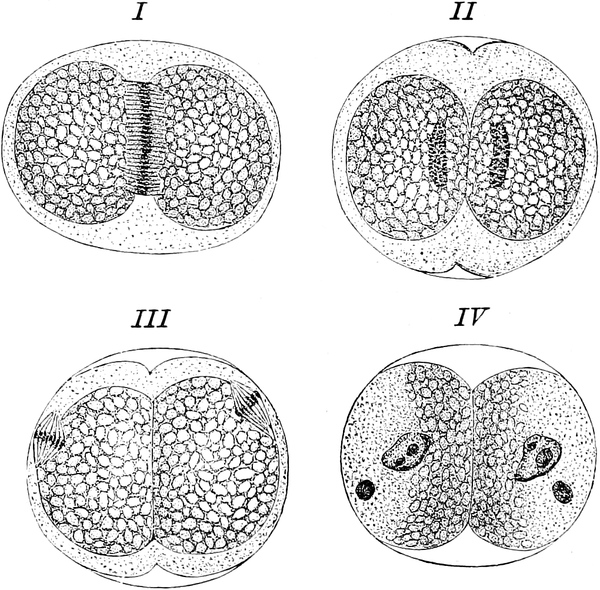
Fig. 151.
Fig. 150. Zygote von Closterium kurz vor der Keimung. Nach KLEBAHN Taf. XIII, Fig. 3.
Fig. 152. Zwei aus einer Copulationsspore entstandene Closterien vor dem Verlassen ihrer Hülle.
Fig. 151. Verschiedene Keimstadien von Closterium. Nach KLEBAHN Taf. XIII, Fig. 6 b, 8, 9, 11, 13.
Währenddem hat sich auch der Protoplasmakörper der Zygote in zwei Halbkugeln (Fig. 151 IV) getheilt, von denen eine jede zwei aus Theilung einer Spindel hervorgegangene Kerne einschliesst. Die beiden Kerne gewinnen rasch ein verschiedenartiges Aussehen, indem der eine (der Grosskern nach Klebahn) gross und bläschenförmig wird, der andere, (der Kleinkern), klein bleibt, sich besonders intensiv färbt und später spurlos verschwindet. Wie mir scheint, geht der Kleinkern zu Grunde und löst sich auf, ähnlich wie die Bruchstücke des Hauptkerns und die Nebenspindeln bei Infusorien. Noch ehe die Auflösung beendet ist, nehmen die beiden Theilhälften der Zygote allmählich die Form einer gewöhnlichen Closteriumzelle an (Fig. 152).
Was haben die doppelten, ohne Pause aufeinander folgenden Theilungen des Keimkerns für eine Bedeutung? Mir scheint durch sie derselbe Zweck, wie durch die Reductionstheilung bei der Reife der Ei- und Samenzelle, nur in einer etwas anderen Weise, erreicht zu werden. Wie hier vor der Befruchtung durch die doppelte Theilung des Kerns eine Reduction der Kernsubstanz auf die Hälfte eines Normalkerns herbeigeführt und so eine Summirung der Kernsubstanz durch Verschmelzung zweier Kerne in Folge der Befruchtung verhindert wird, so scheint mir bei den Desmidiaceen erst nach der Befruchtung eine Reduction der Kernsubstanz noch nachträglich vorgenommen und die durch die Copulation zweier Vollkerne hervorgerufene Verdoppelung der Kernmasse wieder zum Normalmaass zurückgeführt zu werden. Der Keimkern wird anstatt in zwei Tochterkerne durch sich unmittelbar folgende Theilungen in vier Enkelkerne zerlegt, anstatt halbirt, geviertelt: der Protoplasmakörper aber wird nur halbirt, und jede Theilhälfte erhält nur einen in Function tretenden Kern, während zwei der vier Kerne als entbehrlich geworden zu Grunde gehen.
Durch eine genaue Zählung der Kernsegmente in den verschiedenen Stadien müsste sich meine Annahme zur Gewissheit erheben lassen. Zu ihren Gunsten lässt sich vorläufig eine von Klebahn häufig gemachte Beobachtung anführen, dass bei Cosmarium die vier vom Keimkern abstammenden Enkelkerne auf die beiden Theilhälften der Zygote in ungleicher Zahl vertheilt werden, indem die eine einen einzigen activen Kern, die andere drei Kerne erhält, von denen zwei rückgebildet werden. Bei den zwei dem Untergang verfallenen Kernen ist es eben gleichgültig, ob sie beiden oder nur einer Zelle bei der Theilung zufallen; sie verhalten sich dabei wie Dottereinschlüsse.
Während bei den Desmidiaceen Copulation isolirt lebender Zellen beobachtet wird, lehren uns die Zygnemaceen, wie sich die Copulationsprocesse auch bei Zellcolonien abspielen können, bei denen viele Einzelzellen zu langen Fäden in einer Reihe untereinander verbunden sind.
Wenn in dem dichten Fadenfilz, mit welchem die Alge die Gewässer überzieht, zwei Fäden eine längere Strecke nahe beieinander liegen, kommt es zwischen benachbarten Zellen zu Conjugationen. Gewöhnlich treten alle Zellen gleichzeitig in die Vorbereitung zur Fortpflanzung ein; sie treiben seitliche Ausstülpungen einander entgegen. Diese verschmelzen an den Berührungsstellen, indem sich die Scheidewand auflöst, und stellen so quere Kanäle dar, welche in regelmässigen Entfernungen die beiden in Conjugation begriffenen Fäden wie die Sprossen einer Leiter verbinden (Fig. 153). Die Protoplasmakörper ziehen sich darauf von der Cellulosewand zurück und verschmelzen nach einiger Zeit untereinander.
Bei verschiedenen Arten der Zygnemaceen zeigt sich hierbei ein an und für sich geringfügiger, aber gerade dadurch interessanter und bemerkenswerther Unterschied: denn er lehrt uns, in welcher Weise sich zuerst Geschlechtsdifferenzen ausbilden können.
Bei Monjeotia z. B. treten die beiden Protoplasmakörper in ähnlicher Weise wie bei den Desmidiaceen in den Copulationskanal ein und verschmelzen hier untereinander zu einer Zygote, die sich kuglig abrundet, Flüssigkeit auspresst und mit einer Membran umgiebt. In diesem Fall verhalten sich beide Zellen genau gleichartig; man kann weder die eine noch die andere als männlich oder weiblich bezeichnen.
Bei anderen Arten, wie bei Spirogyra (Fig. 153), bleibt die eine Zelle passiv in ihrer Zellhaut liegen und wird von der anderen Zelle, welche daher als die männliche bezeichnet werden kann, aufgesucht. Diese nämlich wandert in den Copulationskanal ein und durch ihn hindurch zu der weiblichen Zelle hin, als ob sie von ihr angezogen würde, und verschmilzt mit ihr zur Zygote (Fig. 153 A a).
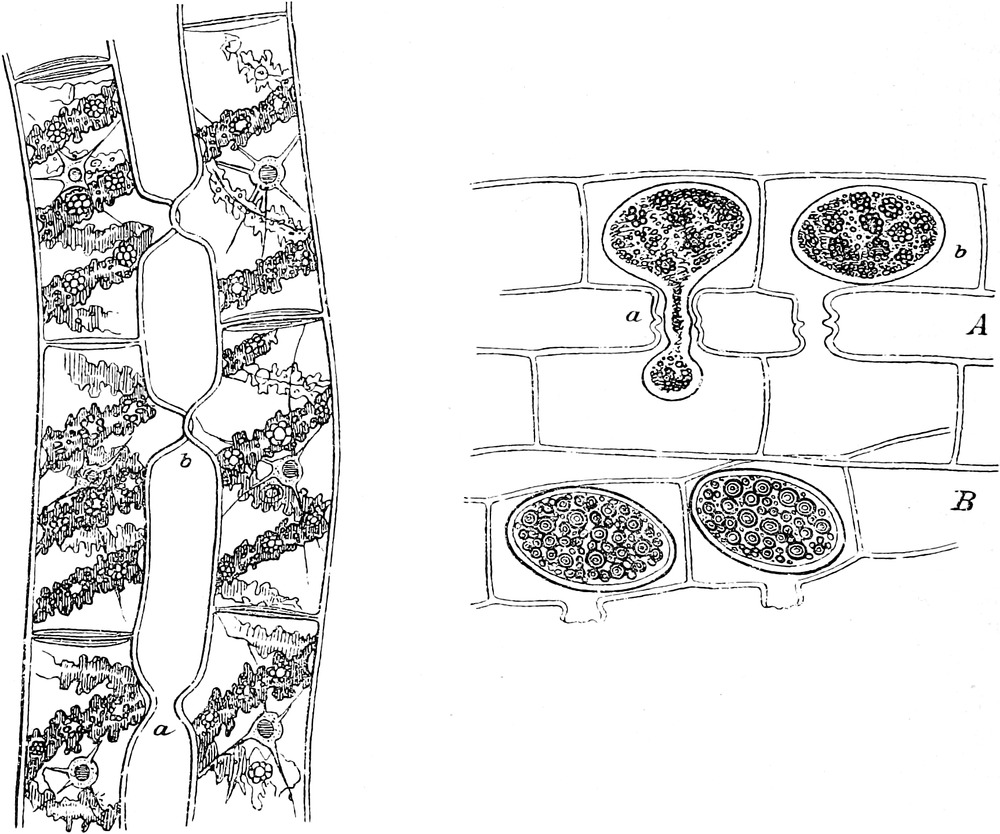
Fig. 153. Spirogyra longata.
Nach S
ACHS
Fig. 410.
Links einige Zellen zweier sich zur Copulation vorbereitender Fäden; sie zeigen die schraubenförmig gewundenen Chlorophyllbänder, in denen an verschiedenen Stellen kranzartige Anordnungen von Stärkekörnern liegen; ausserdem sind kleine Oeltröpfchen in ihnen vertheilt. Der Zellkern jeder Zelle ist von Plasma umgeben, von welchem aus Fäden zur Zellwand gehen. Bei
b
Vorbereitungen zur Copulation. Rechts
A
in Copulation begriffen: bei
a
schlüpft der Plasmakörper der einen Zelle soeben hinüber in die andere; bei
b
haben sich die beiden Plasmakörper schon vereinigt; in
B
sind die jungen Zygoten schon mit einer Haut umkleidet.
Durch Behandlung der Zygote mit Reagentien und Farbstoffen lässt sich noch weiter feststellen, dass bald nach der Vereinigung der Zellen auch ihre Kerne sich nähern und zum Keimkern verbinden. Da in einem Faden sich alle Zellen entweder nur männlich oder weiblich verhalten, so hat von zwei copulirten Fäden gewöhnlich der eine den Inhalt aller seiner Zellkammern entleert, während der andere in jedem Fach eine Zygote einschliesst (Fig. 153 B). Diese umgiebt sich mit verschiedenen Hüllen, macht gewöhnlich bis zum nächsten Frühjahr ein längeres Ruhestadium durch, beginnt dann zu keimen und wächst wieder durch Quertheilungen zu einem langen Spirogyrafaden aus.
Der oben hervorgehobene Unterschied zwischen männlichen und weiblichen Spirogyrafäden ist übrigens keineswegs ein streng durchgeführter, sondern mehr ein relativer. Es kann nämlich der Fall eintreten, dass ein und derselbe Spirogyrafaden umbiegt und dass sein eines Ende in die Nähe vom anderen Ende zu liegen kommt. Unter solchen Bedingungen erfolgen Paarungen zwischen den an entgegengesetzten Enden desselben Fadens gelegenen Zellen, so dass Zellen, die unter anderen Verhältnissen als männliche fungirt haben würden, eine weibliche Rolle spielen.
Bei den bisher betrachteten Familien der Noctilucen und Conjugaten, denen sich andere wie die Diatomeen, Gregarinen etc. anschliessen, sind es grosse, in Membranen eingehüllte Protoplasmakörper, die sich paaren, nachdem sie Perioden vegetativer Vermehrung durch einfache Theilung durchgemacht haben. Eine zweite Reihe von Urformen der geschlechtlichen Zeugung liefern uns niedere, pflanzliche Organismen aus der Klasse der Algen. Zum Zwecke der Fortpflanzung erzeugen sie besondere Zellen, die Schwärmsporen, die sich durch ihre geringe Grösse, durch das Fehlen einer Zellhaut und durch den Besitz von zwei Geisseln oder zahlreichen Flimmern, mit denen sie sich selbstthätig im Wasser fortbewegen, von den vegetativen Zellen unterscheiden. Sie sind von besonderem Interesse dadurch, dass sie uns zeigen, wie sich durch allmähliche Differenzirung und Arbeitstheilung nach entgegengesetzter Richtung hochgradigere Gegensätze — typische Eier und typische Samenfäden — entwickelt haben.
Die Schwärmsporen sind kleine, bewegliche, membranlose Zellen von meist birnenförmiger Gestalt (Fig. 154, 155, 157, 158). Ihr zugespitztes Ende, der Schnabel, ist das vordere und schreitet bei der Fortbewegung im Wasser voran; es besteht aus hyalinem Protoplasma, das häufig einen rothen oder braunen Pigmentfleck (Augenfleck) einschliesst; der übrige Körper ist je nach der Art hyalin oder durch Farbstoff grün, roth oder braun gefärbt und enthält eine oder zwei contractile Vacuolen (Fig. 154). Zur Fortbewegung dienen Geisseln, die vom hyalinen Vorderende entspringen, gewöhnlich ein Paar (Fig. 154), seltener eine einzige oder vier oder mehr (Fig. 14).
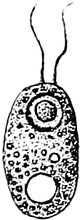
Fig. 154. Schwärmspore von Mikrogromia socialis.
Nach R. H
ERTWIG
.
Die Schwärmsporen entstehen zu gewissen Zeiten entweder durch wiederholte Zweitheilung oder auf dem Wege der Vielzellbildung (S. 187 bis 189) aus dem Inhalt einer Mutterzelle. Bei Zweitheilung ist ihre Anzahl eine geringe und beläuft sich auf 2, 4, 8 oder 16, bei der Vielzellbildung dagegen kann die Zahl eine ausserordentlich grosse werden, weil dann auch die Mutterzellen einen beträchtlichen Umfang besitzen, und kann bis auf 7000 und 20000 steigen. Durch Platzen der Membran der Mutterzelle an irgend einer Stelle wird die Brut nach Aussen entleert.
Es giebt zwei Arten von Schwärmsporen, die zu verschiedenen Zeiten gebildet werden, Schwärmsporen, die sich auf ungeschlechtlichem Wege vermehren und neuen kleinen Algenpflänzchen den Ursprung geben, und Schwärmsporen, die der Befruchtung bedürfen. Die Mutterzellen, aus denen die ersteren entstehen, nennen die Botaniker Sporangien, die Mutterzellen der letzteren dagegen Gametangien.
Uns interessiren hier nur die Geschlechtssporen oder Gameten.
Bei vielen, niederen Algen können die sich paarenden Schwärmsporen (Fig. 155 a, b, c, d) in keiner Weise, weder nach ihrer Grösse, noch nach ihrer Bewegung oder nach ihrem sonstigen Verhalten voneinander unterschieden werden (Ulothrix, Bryopsis, Botrydium, Acetabularia etc.).
Bei anderen Arten dagegen bilden sich Geschlechtsdifferenzen heraus, welche uns männliche und weibliche Gameten zu unterscheiden gestatten. Im ersteren Falle redet man von einer isogamen, im zweiten Fall von einer oogamen Befruchtung.
Als Beispiel isogamer Befruchtung (Fig. 155) kann uns Botrydium oder Ulothrix dienen. Wenn man in einem Wassertropfen die kleinen Schwärmer aus verschiedenen Zuchten zusammenbringt und mit starker Vergrösserung beobachtet, so kann man leicht wahrnehmen, wie alsbald einzelne mit ihren hyalinen Vorderenden sich einander nähern (b), sich berühren und nach kurzer Zeit zu verschmelzen beginnen. Zuerst legen sie sich mit ihren Seiten aneinander (c), dann schreitet die Verwachsung allmählich von vorn nach hinten fort.
Die Paarlinge (d) tummeln sich noch weiter im Wasser herum. Ihre Bewegung ist eine unregelmässig intermittirende und nimmt einen taumelnden Charakter an. Nach einiger Zeit ist die Verschmelzung so weit gediehen, dass beide Gameten einen einzigen ovalen, entsprechend dickeren Körper bilden, an welchem nur noch die Anwesenheit von zwei Pigmentflecken und vier Geisseln den Ursprung durch Paarung zweier Individuen verrathen (e, f). Jetzt verlangsamt allmählich das Pärchen (die Zygote) ihre Bewegungen, kommt schliesslich zur Ruhe, verliert die vier Geisseln, indem sie eingezogen oder abgeworfen werden, rundet sich ab und umgiebt sich mit einer besonderen Membran.
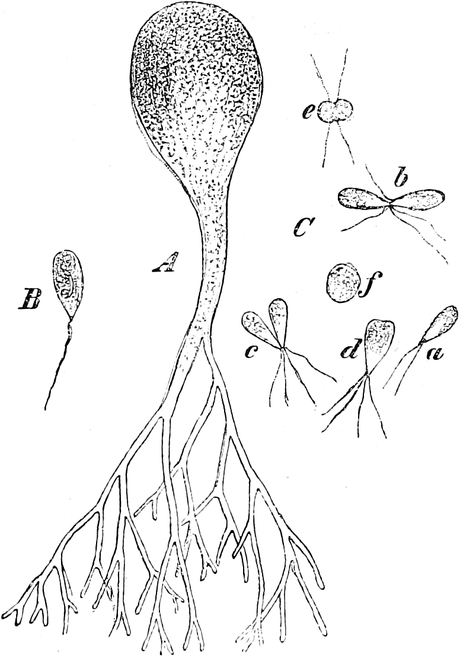
Fig. 155. Botrydium granulatum.
Nach S
TRASBURGER
Fig. 139.
A
Ein frei gelegtes Pflänzchen mittlerer Grösse. Vergr. 28.
B
Eine Schwärmspore mit Jodlösung fixirt. Vergr. 540.
C
Isogameten und zwar bei
a
ein einzelner Isogamet, bei
b
zwei Isogameten in der ersten Berührung, bei
c
,
d
u.
e
in seitlicher Verschmelzung, bei
f
die Zygospore nach vollzogener Verschmelzung der Gameten. Vergr. 540.
Häufig tritt das Ruhestadium schon wenige Minuten nach Beginn der Paarung ein, in anderen Fällen aber kann die Zygote noch membranlos und mit vier Cilien versehen drei Stunden lang im Wasser herumschwärmen, bis sie die Geisseln einzieht und zu Boden sinkt.
Noch besser als bei den Conjugaten lässt sich das allmähliche Auftreten der geschlechtlichen Differenzirung bei den zahlreichen Arten niederer Algen mit Gametenbefruchtung verfolgen.
Wie bei Spirogyra (Fig. 153) von den beiden sonst völlig gleichartigen Paarungen der eine als weiblich bezeichnet werden kann, weil er in Ruhe verharrt und zum Zweck der Conjugation von dem anderen aufgesucht werden muss, so bildet sich ein analoges Verhältniss bei den Phaeosporeen und Cutleriaceen heraus.
Bei einzelnen Phaeosporeenarten sind männliche und weibliche Schwärmzellen bei ihrer Entleerung aus den Mutterzellen voneinander nicht unterscheidbar, sie sind von gleicher Grösse und mit einem Pigmentfleck und zwei Geisseln versehen. In der Zeit des Herumschwärmens tritt eine Paarung nicht ein. Bald aber macht sich ein Unterschied zwischen den Gameten geltend. Einige von ihnen kommen frühzeitig zur Ruhe, sie heften sich mit der Spitze einer Geissel an irgend einen festen Gegenstand an und bringen demselben durch Verkürzung und Einziehung der Geissel ihren Plasmakörper näher, wobei auch die zweite Cilie eingezogen wird. Solche zur Ruhe gekommenen Schwärmzellen können jetzt als weibliche bezeichnet werden; sie sind nur für wenige Minuten befruchtungsfähig; sie üben, wie Berthold sich ausdrückt, auf die längere Zeit im Wasser herumschwimmenden männlichen Gameten „eine starke Anziehungskraft aus“, so dass um ein Ei oft Hunderte von Schwärmern in wenigen Augenblicken vereint sind, von denen einer mit ihm verschmilzt (VII. 51).
Schon deutlicher ausgeprägt ist die Geschlechtsdifferenz bei den Cutleriaceen. Hier nämlich gewinnen die geschlechtlichen Schwärmzellen während ihrer Entstehung in der Mutterpflanze eine ungleiche Grösse, indem die weiblichen einzeln, die männlichen gewöhnlich in Achtzahl in einer Mutterzelle gebildet werden. Der Grössenunterschied fällt daher schon ziemlich auf. Beide Gametenarten schwärmen eine Zeit lang im Wasser herum; eine Befruchtung kann aber erst erfolgen, wenn der weibliche Schwärmer zur Ruhe kommt, die Geisseln einzieht und sich abrundet. Das befruchtungsfähig gewordene Ei zeigt einen hyalinen Fleck, welcher durch das Einziehen des vorderen, schnabelartigen Endes entstanden ist, den sogenannten Empfängnissfleck. Das ist die einzige Stelle, an welcher einer von den kleinen, männlichen Schwärmern, welche bald die zur Ruhe gekommene, weibliche Zelle umlagern, die Paarung ausführen kann. Nach vollendeter Befruchtung umgiebt sich die Zygote mit einer Cellulosehülle.
Die bei den Cutleriaceen schon schärfer ausgeprägte Geschlechtsdifferenz findet sich noch mehr gesteigert bei den Fucaceen, Characeen und anderen Algen. Hier treten die weiblichen Zellen, die eine sehr beträchtliche Grösse erreichen, auch nicht vorübergehend mehr in das Stadium einer Schwärmzelle ein. Entweder werden sie als kuglige, unbewegliche Eizellen bei der Reife nach Aussen ausgestossen (Fucaceen) (Fig. 156 G), oder sie werden an ihrem Ursprungsort, im Oogonium, befruchtet. Im Gegensatz zu den Eizellen sind die männlichen Schwärmzellen (Fig. 156 F) noch kleiner und beweglicher als die bisher betrachteten Schwärmsporen geworden und haben den charakteristischen Habitus von Samenfäden angenommen; sie bestehen fast nur aus Kernsubstanz und den beiden Geisseln, die als Fortbewegungsorgane dienen.
Die Ansicht, dass Eier und Samenfäden der höheren Algen sich genetisch von Schwärmzellen ableiten lassen, die sich nach entgegengesetzten Richtungen geschlechtlich differenzirt und allmählich einen specifisch weiblichen und männlichen Habitus angenommen haben, lässt sich noch schlagender als durch die eben angestellte Vergleichung der einzelnen Algenfamilien an der kleinen Familie der Volvocineen beweisen.
Für die uns beschäftigende Frage sind die Volvocineen dadurch besonders interessant und wichtig, dass hier einzelne Arten, die sich sonst in ihrem ganzen Aussehen ausserordentlich ähnlich sind, Pandorina morum, Eudorina elegans, Volvox globator, theils keine, theils eine deutlich ausgeprägte Geschlechtsdifferenz der beiden Geschlechtszellen, theils ein vermittelndes Zwischenstadium erkennen lassen. Das ganze Verhältniss ist so beweisend, dass es sich wohl verlohnt, auf dasselbe noch etwas näher einzugehen.
Pandorina morum, in der Literatur dadurch besonders bekannt geworden, dass Pringsheim (VII. 35) an dieser Art die Paarung zweier Schwärmsporen zuerst im Jahre 1869 entdeckt hat, bildet kleine Colonien von etwa 16 Zellen, die in eine gemeinsame Gallerte eingeschlossen sind. (Fig. 157 II). Jede Zelle trägt an ihrem vorderen Ende zwei Geisseln, die über die Oberfläche der Gallerte hervorsehen und zur Fortbewegung dienen.
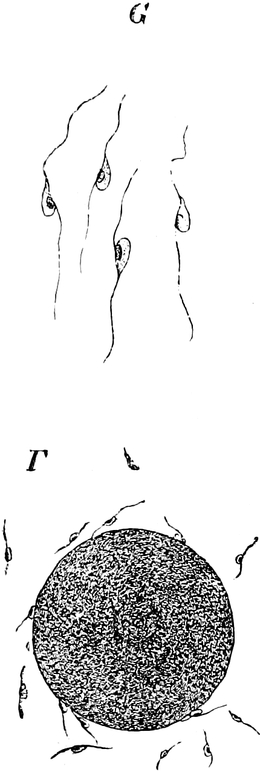
Fig. 156. Spermatozoïden von Fucus platycarpus.
540mal vergr. Ei mit anhaftenden Spermatozoïden. 240mal vergr. Nach S
TRASBURGER
Fig. 142
G
u.
F
.
Zur Zeit der geschlechtlichen Fortpflanzung zerfällt jede der sechzehn Zellen gewöhnlich in acht Zellen, die nach einiger Zeit frei werden und für sich allein herumschwärmen (Fig. 157 III, IV). Die ovalen Schwärmzellen, deren Körper grün ist mit Ausnahme des vorderen, etwas zugespitzten Endes, welches hyalin ist, einen rothen Pigmentfleck und zwei Geisseln besitzt, sind nicht genau von gleicher Grösse. Hierin ist indessen ein Geschlechtsunterschied bei Pandorina nicht ausgeprägt. Denn wenn von zwei verschiedenen Colonien Schwärmzellen zusammenkommen, so bemerkt man in dem Gewimmel bald solche, die sich paarweise (Fig. 157 IV, V) nähern, bald zwei kleine, bald zwei gleich grosse, bald eine kleine und eine grosse.
Beim Zusammentreffen berühren sich die Paarlinge zuerst mit ihren Spitzen (IV), verschmelzen dann zu einem bisquitförmigen Körper, der sich nach und nach zu einer Kugel zusammenzieht (VI, VII, X). Diese umgiebt sich einige Minuten nach der Befruchtung mit einer Cellulosehaut und tritt als Zygote in ein Ruhestadium ein, in welchem ihre ursprünglich grüne Farbe in ein Ziegelroth übergeht.
Eine geschlechtliche Verschiedenheit macht sich bei Eudorina elegans bemerkbar, bei einer Art, welche der Pandorina sonst ausserordentlich ähnlich und wie diese eine Gallertblase ist, die 16 bis 32 Zellen enthält (Fig. 158). Zur Zeit der Fortpflanzung differenziren sich die Colonien in männliche und weibliche.
In den weiblichen Colonien wandeln sich die einzelnen Zellen, ohne sich weiter zu theilen, in kuglige Eier um; in den männlichen Colonien dagegen zerfällt jede Zelle durch mehrfach wiederholte Theilung in ein Bündel von 16 bis 32 Samenfäden (Fig. 158 M1). Dieselben sind „lang gestreckte Körperchen, vorn mit zwei Cilien, deren anfangs grüne Farbe sich in gelb verwandelt“. Die einzelnen Bündel lösen sich von der Muttercolonie los und schwärmen im Wasser herum. „Treffen sie auf eine weibliche Colonie, so verwickeln sich die beiderseitigen Cilien; die männliche Colonie wird dadurch fixirt und fällt dabei auseinander, worauf sich die vereinzelten Samenfäden, die sich jetzt noch bedeutend strecken, in die Gallertblase der weiblichen Colonie einbohren. Sie dringen hier bis zu den Eizellen vor und legen sich (oft in Mehrzahl), nachdem sie an denselben tastend herumgekrochen sind, an sie an. Man darf annehmen, was in vielen anderen Fällen ja beobachtet ist, dass eine dieser Samenzellen in je eine Eizelle eindringt“ (Sachs).
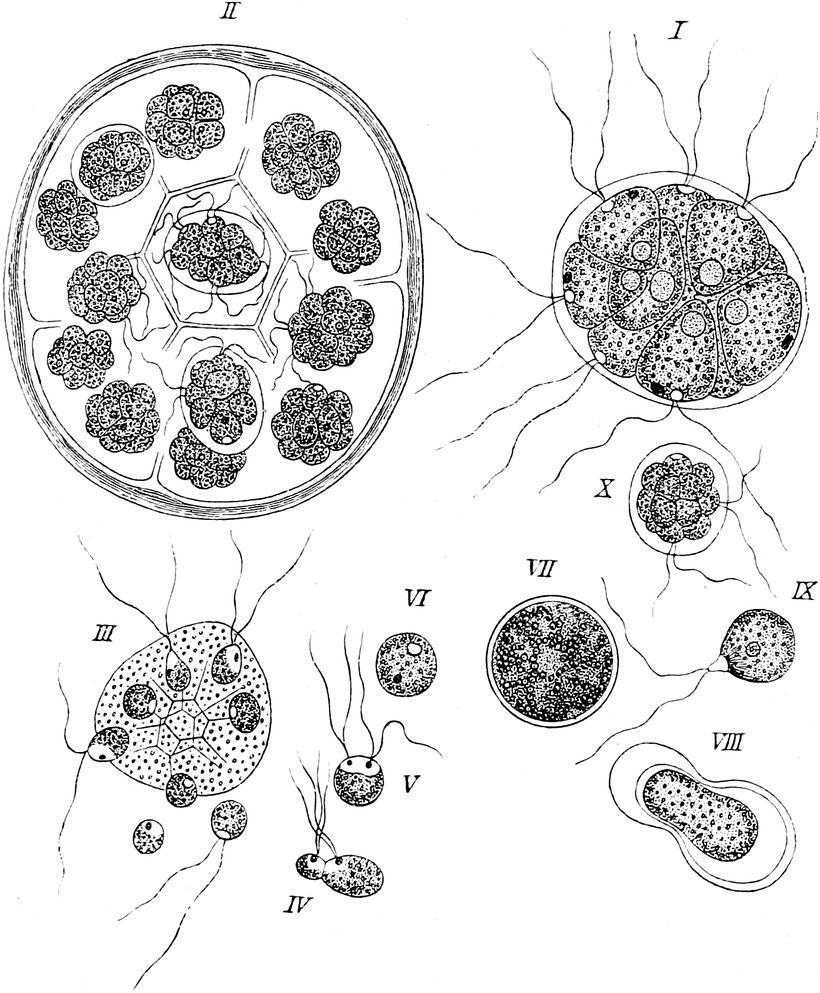
Fig. 157. Entwicklung von Pandorina morum
nach P
RINGSHEIM
. Aus S
ACHS
Fig. 411.
I
Eine schwärmende Familie;
II
eine solche in 16 Tochterfamilien getheilt;
III
eine geschlechtliche Familie, deren einzelne Zellen aus der verschleimten Hülle austreten;
IV
,
V
Paarung der Schwärmer;
VI
eine eben entstandene,
VII
eine ausgewachsene Zygote;
VIII
Umbildung des Inhaltes einer Zygote in eine grosse Schwärmzelle;
IX
dieselbe frei;
X
junge Familie aus der letzteren entstanden.
Bei Volvox globator (Fig. 159) endlich ist die Differenzirung am weitesten durchgeführt, indem von den sehr zahlreichen Zellen, welche eine kuglige Colonie zusammensetzen, ein Theil vegetativ bleibt, der andere Theil sich in Geschlechtszellen umwandelt. Bei Volvox erreichen die Eier (O) noch eine viel bedeutendere Grösse als bei Eudorina und werden von den sehr kleinen, mit zwei Geisseln herumschwärmenden Samenelementen (S) befruchtet.
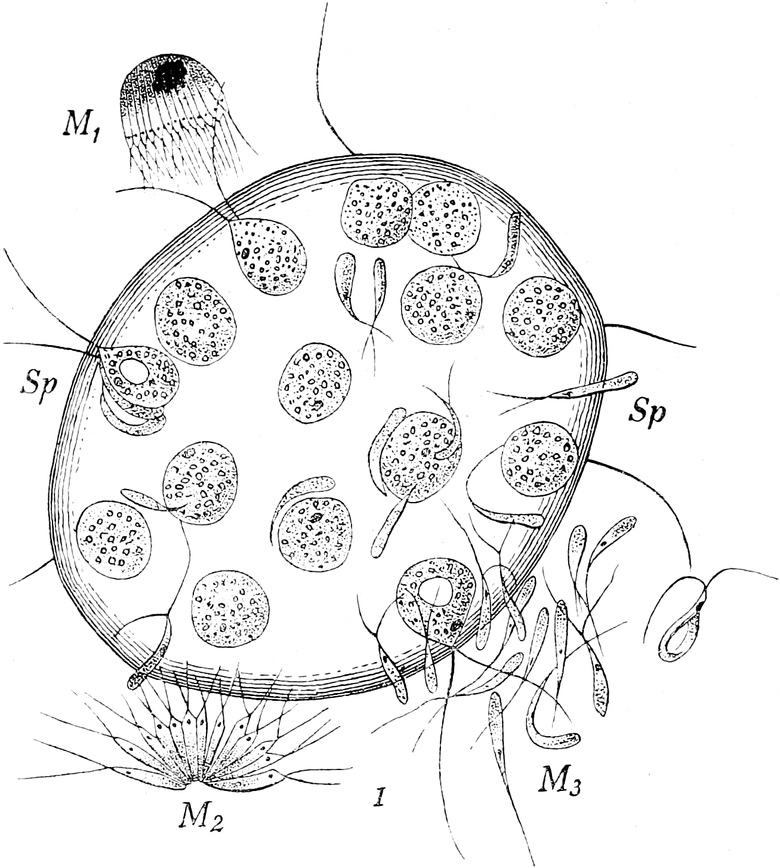
Fig. 158. Eudorina elegans, eine weibliche Colonie (Coenobium) von Zoospermien
Sp
umschwärmt (nach G
OEBEL
).
M
1
-
M
3
Bündel von Samenzellen. Aus S
ACHS
Fig. 412.
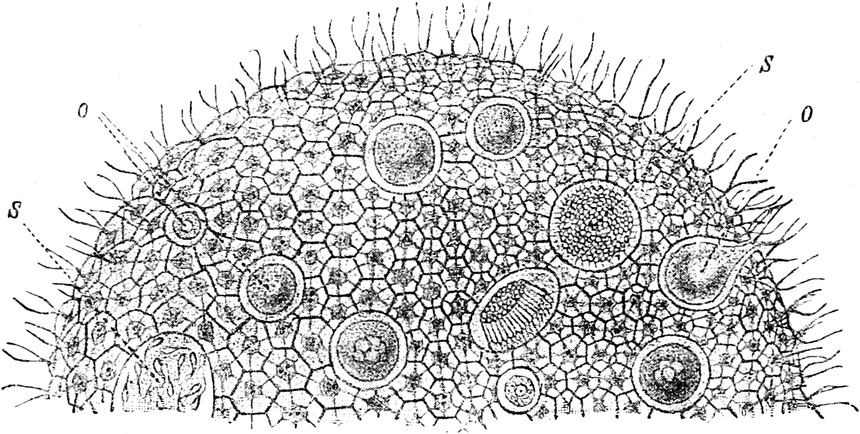
Fig. 159. Volvox globator, geschlechtliche, hermaphroditische Colonie
, nach C
IENKOVSKY
und B
ÜTSCHLI
combinirt und etwas schematisirt. Nach L
ANG
Fig. 21.
S
männliche Gameten (Spermatozoen),
O
weibliche Gameten (Eier).
Angesichts der im fünften Abschnitt zusammengestellten, zahlreichen Thatsachen kann wohl der Satz als feststehend betrachtet werden, dass Ei- und Samenzellen aus ursprünglich gleichartig beschaffenen, nicht unterscheidbaren Fortpflanzungszellen durch Differenzirung nach entgegengesetzten Richtungen entstanden sind.
II. Die Physiologie des Befruchtungsprocesses.
Nach der Besprechung der morphologischen Erscheinungen, die sich im Organismenreich beim Befruchtungsprocess beobachten lassen, bleibt noch ein weites und schwieriges Forschungsgebiet übrig, die Untersuchung der Eigenschaften, welche Zellen haben müssen, um sich im Zeugungsakt vereinigen und den Ausgang für einen neuen Entwicklungscyclus bilden zu können.
Zunächst ist klar, dass nicht jede Zelle eines vielzelligen Organismus in die Lage kommt, zu befruchten oder befruchtet zu werden, und dass auch die Geschlechtszellen nur in einem oft kurz bemessenen Zeitraum für die Zeugung tauglich sind. Es müssen also in den Zellen zum Zweck der Zeugung bestimmte Dispositionen geschaffen werden, welche wir einstweilen unter dem allgemeinen Ausdruck „Befruchtungsbedürftigkeit“ zusammenfassen wollen.
Die Befruchtungsbedürftigkeit der Zellen allein garantirt aber noch lange nicht den Erfolg der Befruchtung. Dies lehrt schon die einfache Thatsache, dass reife Eier und reifer Samen, von verschiedenen Organismen zusammengebracht, sich nicht entwickeln. Zur Befruchtungsbedürftigkeit muss daher noch ein zweiter Faktor hinzutreten; die Zellen, welche sich geschlechtlich vereinigen sollen, müssen in ihrer Organisation zu einander passen und in Folge dessen auch die Neigung haben, sich miteinander zu verbinden. Wir wollen den Inbegriff dieser Eigenschaften als sexuelle Affinität bezeichnen.
Die Physiologie des Befruchtungsprocesses lässt sich mithin in zwei Abschnitte zerlegen: 1) in die Untersuchung der Befruchtungsbedürftigkeit, und 2) in die Untersuchung der sexuellen Affinität der Zellen. In einem dritten Abschnitt soll schliesslich noch auf einige Hypothesen eingegangen werden, welche von verschiedenen Seiten über das Wesen und den Zweck der Befruchtung aufgestellt worden sind.
1) Die Befruchtungsbedürftigkeit der Zellen.
Unter Befruchtungsbedürftigkeit verstehen wir einen Zustand der Zelle, in welchem sie für sich allein die Fähigkeit verloren hat, den Lebensprocess fortzusetzen, diese Fähigkeit aber in sehr gesteigertem Maasse wiedererlangt, wenn sie sich mit einer zweiten Zelle im Befruchtungsakt verbunden hat. Ein tieferer Einblick in das Wesen dieses Zustandes fehlt uns zur Zeit noch durchaus; denn es handelt sich um Eigenschaften der lebenden Substanzen, die ausserhalb des Bereiches unserer sinnlichen Wahrnehmung liegen und sich uns nur in ihren Folgeerscheinungen zu erkennen geben. Auch ist das dunkle Gebiet von Seiten der Physiologie noch wenig einer planmässigen Bearbeitung unterworfen worden. Wir können daher hier nur auf einige Erfahrungen aufmerksam machen, welche die physiologische Untersuchung in Zukunft zu vermehren und zu vertiefen haben wird. Am meisten wird hierbei eine Vertiefung unseres Wissens von dem Studium der niedersten Organismen zu erwarten sein, weil bei ihnen die Einzelzellen eine absolute oder wenigstens noch eine sehr grosse Selbständigkeit besitzen und nicht wie bei den höheren Organismen in Beziehung und Abhängigkeit von den übrigen Zellen des Körpers gesetzt sind. Bei ihnen sind daher die Grundphänomene des Lebens in grösserer Klarheit zu erkennen.
Die zur Zeit vorliegenden Erfahrungen lassen sich in folgende Sätze zusammenfassen:
1) Die Befruchtungsbedürftigkeit tritt im Leben der Zelle periodisch ein; 2) sie ist überall nur von kurzer Zeitdauer; 3) sie ist bis zu einem gewissen Grade von äusseren Einflüssen abhängig, und damit hängt es dann wohl 4) zusammen, dass sie in manchen Fällen aufgehoben und in Parthenogenese und Apogamie umgewandelt werden kann.
Dass die Befruchtungsbedürftigkeit eine im Lebensprocess der Zelle periodisch eintretende Erscheinung ist, lässt sich am besten auf experimentellem Wege durch das Studium der Infusorien beweisen. Maupas (VII. 30) hat hierüber sehr zahlreiche, verdienstvolle Untersuchungen angestellt.
Im Leben eines jeden Infusors kann man eine Periode der Geschlechtslosigkeit und eine Periode der Geschlechtsreife oder Befruchtungsbedürftigkeit unterscheiden. Die erstere beginnt, wenn sich zwei Thiere gegenseitig befruchtet haben und sich trennen; sie führt zu einer Vermehrung der Individuen durch rasch sich wiederholende Theilungen. In dieser Periode kann man Individuen aus verschiedenen Culturen zusammenbringen und sie Bedingungen aussetzen, welche für die Conjugation am günstigsten sind, ohne dass es jemals zu Paarungen kommt. Erst längere Zeit nach Ablauf einer Paarung werden die Infusorien wieder befruchtungsbedürftig. Werden dann aus zwei Culturen Individuen unter geeigneten Bedingungen zusammengebracht, so erfolgen reichliche Paarungen in wenigen Tagen.
So hat Maupas festgestellt, dass bei Leukophrys patula Individuen, welche der 300sten bis 450sten Generation nach einem Befruchtungsakt angehören, allein fruchtbare Copulationen ausführen können. Für Onychodromus fällt diese Periode der Befruchtungsbedürftigkeit etwa zwischen die 140ste bis 230ste Generation und bei Stylonichia pustulata zwischen die 130ste bis 180ste.
Der zweite Satz lautete: Der Zustand der Befruchtungsbedürftigkeit ist überall nur von kurzer Zeitdauer. Wenn Zellen, die für die Befruchtung reif sind, nicht rechtzeitig befruchtet werden, so gehen sie bald zu Grunde. Infusorien, Algenschwärmer, thierische Eizellen liefern uns Beispiele zur Bestätigung des Satzes.
Wenn die einzelnen Individuen der oben als Beispiel benutzten Infusorienart „Onychodromus“ während der 140sten bis 230sten Generation oder Individuen von Stylonichia pustulata während der 130sten bis 180sten Generation nicht Gelegenheit erhalten, sich zu paaren, so werden sie geschlechtsalt oder überreif. Sie fahren zwar noch fort, sich durch Theilung zu vervielfältigen, können sich sogar noch paaren, aber ohne Erfolg. Denn trotz der Paarung verfallen sie einer allmählichen Zerstörung ihrer Organisation durch „senile Degeneration“, wie sich Maupas ausdrückt. Der Eintritt derselben lässt sich an charakteristischen Veränderungen des Kernapparats erkennen.
Schwärmsporen oder Gameten von Algen sterben oft schon nach einigen Stunden ab, wenn sie im Wasser herumgeschwärmt sind, ohne zur Paarung mit geeigneten Individuen gelangt zu sein. Die Empfängnissfähigkeit der grossen weiblichen Gameten von der Algenart Cutleria, wenn sie, zur Ruhe gekommen, ein Ei darstellen, ist eine verhältnissmässig kurze. Mehrfache, von Falkenberg (VII. 10) angestellte Versuche zeigten, „dass am dritten Tage nach eingetretener Ruhe noch nahezu alle Eier, am vierten Tage noch etwa die Hälfte derselben befruchtungsfähig waren. Nach dem vierten Tage hatten dagegen alle Eier ihre Empfängnissfähigkeit eingebüsst, und wenn man ihnen auch jetzt noch Spermatozoïdien zusetzte, so begannen sie doch nunmehr unter denselben Erscheinungen wie die vom Zutritt der befruchtenden Zellen gänzlich abgeschnitten gebliebenen Eier abzusterben“.
Reife, thierische Eizellen endlich haben, auch wenn sie sich in ihrer normalen Umgebung im Eierstock oder in den Eileitern befinden, nicht minder eine kurze Lebensdauer; sie gerathen bald in einen Zustand der Ueberreife (Hertwig VI. 32). Ihre normalen Functionen sind geschwächt; sie lassen sich zwar noch eine Zeit lang befruchten, aber in anormaler Weise durch Eindringen vieler Samenfäden; sie treten in Folge dessen auch nur in einen gestörten Entwicklungsprocess ein. Hierin liegt unverkennbar eine Analogie mit der senilen Degeneration von Infusorien vor, die zur geeigneten Zeit an der Paarung verhindert waren.
Der dritte Satz, dass das frühere oder spätere Eintreten der Befruchtungsbedürftigkeit von äusseren Verhältnissen abhängig ist, lässt sich in einigen Fällen sehr deutlich nachweisen.
So kann man durch stets erneute, reichliche Zufuhr von Nahrung Culturen von Infusorien an der Paarung verhindern (Maupas VII. 30). Sie fahren fort, sich zu theilen, bis die ganze Cultur in Folge Eintritts von „seniler Degeneration“ (Entartung) ausstirbt. Umgekehrt kann man Culturen von Infusorien, welche sich dem Zustand der Geschlechtsreife nähern, durch Nahrungsentziehung sofort zur Paarung bestimmen. „Une riche alimentation“, bemerkt Maupas, „endort l’appétit conjugant; le jeûne, au contraire, l’éveille et l’excite.“
Ebenso hat Klebs (VII. 28) für das Wassernetz (Hydrodiktyon) einen Einfluss der äusseren Lebensbedingungen auf die Bildung der Geschlechtszellen wahrnehmen und dieselbe bald früher hervorrufen, bald verhindern können.
Klebs hat gesunde, aus der freien Natur stammende Netze zur Gametenbildung dadurch gebracht, dass er sie in eine Rohrzuckerlösung von 7–10% cultivirte. Nach 5–10 Tagen zerfällt das Netz vollständig, indem in fast allen Zellen sich Gameten entwickelten. Ferner wird in den Zellen die Neigung zur Gametenbildung gesteigert, wenn man frische Netze in niedrigen Glasschalen mit relativ wenig Wasser an einem sonnigen Fenster cultivirt. Nach Klebs besteht der Einfluss der Zimmercultur darin, „dass durch sie das Wachsthum zum Stillstand gebracht, dagegen die Erzeugung organischer Substanz mit Hilfe der Assimilation nicht behindert wird, während gleichzeitig ein gewisser Mangel an Nährsalzen eintritt.“
Auf der anderen Seite lässt sich, in ähnlicher Weise wie bei den Infusorien, die geschlechtliche Fortpflanzung unterdrücken. Zu dem Zwecke braucht man nur ein Netz, welches in seinen Zellen Gameten zu bilden beginnt, in eine 0,5–1,0%ige Nährlösung zu übertragen, welche aus 1 Theil schwefelsaurer Magnesia, 1 Theil phosphorsauren Kalis, 1 Theil salpetersauren Kalis und 4 Theilen salpetersauren Kalks besteht. Nach einiger Zeit liefert es ungeschlechtliche Schwärmsporen, namentlich wenn es dann in frisches Wasser zurückgebracht wird.
Nach Beobachtungen von Eidam bildet ein kleiner Pilz, Basidiobolus ranarum, auf reichlichem Nährsubstrat aus Conidien gezüchtet, ein kräftiges Mycel, das gleichzeitig sowohl ungeschlechtliche Fortpflanzungszellen (Conidien) als auch Geschlechtszellen erzeugt. Auf einem erschöpften Nährboden dagegen liefern die Conidien ein spärliches Mycel, welches sich sofort und ausschliesslich durch Geschlechtszellen, die sich zu Zygosporen verbinden, fortpflanzt.
Reichliche Ernährung begünstigt bei Pflanzen, wie die Erfahrung der Gärtner lehrt, die vegetative Vermehrung und behindert die Samenbildung, während umgekehrt Blüthen- und Samenbildung befördert wird durch Beschränkung des vegetativen Wachsthums (Beschneiden von Wurzeln und Sprossen) und dadurch hervorgerufene Hemmung des Nahrungszuflusses.
Auch für Thiere, die sich auf parthenogenetischem Wege vermehren, liegen entsprechende Beobachtungen vor. Wenn der Phylloxera vastatrix die Nahrung entzogen wird, so kommen alsbald, wie Keller (VII. 26) durch Experimente gezeigt hat, die geflügelten Geschlechtsformen zum Vorschein, und es werden befruchtete Eier abgelegt.
In manchen Fällen, namentlich bei niederen Organismen, ist die Befruchtungsbedürftigkeit nur eine relative.
Wenn bei der Alge Ectocarpus (VII. 51) die weibliche Gamete zur Ruhe gekommen ist, so ist sie für wenige Minuten empfängnissfähig geworden. „Erfolgt in dieser Zeit keine Befruchtung, so wird der Geisselfaden vollständig eingezogen, das Ei rundet sich ab und scheidet eine Cellulosehaut aus. Nach 24–48 Stunden zeigen sich dann die ersten Spuren einer parthenogenetischen Keimung.“ Sogar die männlichen Gameten sind hier, wenn auch in geringerem Grade als die weiblichen, spontan entwicklungsfähig. Nachdem dieselben mehrere Stunden herumgeschwärmt sind, gelangen sie schliesslich, wie Berthold mittheilt, zur Ruhe, „aber nur ein Theil entwickelt sich langsam zu sehr schwächlichen und empfindlichen Keimpflanzen, ein anderer Theil desorganisirt sich sogleich oder nach Verlauf von ein bis zwei Tagen“.
Ein sehr eigenthümliches, facultatives Verhältniss zeigen die Bienen, deren Eier sich, gleichgültig ob sie befruchtet werden oder nicht, wieder zu Bienen entwickeln. Nur liefern sie im unbefruchteten Zustand Drohnen, dagegen in Folge der Befruchtung weibliche Thiere (Arbeitsbienen und Königinnen). Zuweilen entstehen Zwitter, wie Leuckart meint, aus Eiern, bei denen die Befruchtung zu spät erfolgte, um die in männlicher Richtung fortgeschrittene Entwicklung ganz umzugestalten. Die Möglichkeit, durch äussere Eingriffe in Geschlechtszellen den Eintritt der Befruchtungsbedürftigkeit zu beschleunigen oder sie im entgegengesetzten Fall aufzuhalten und eventuell aufzuheben, wirft Licht auf die Erscheinungen der Parthenogenese und Apogamie, auf welche wir jetzt noch viertens näher einzugehen haben.
a) Die Parthenogenese.
In den meisten Fällen sind die Geschlechtszellen im Thier- und Pflanzenreich, wenn sie nicht rechtzeitig zur Copulation gelangen, unfehlbar dem raschen Untergang verfallen. Obwohl aus eminent entwicklungsfähiger Substanz bestehend, können sie sich trotzdem nicht beim Fehlen der einen Bedingung entwickeln.
Von der Unmöglichkeit spontaner Entwicklung der Eizellen waren die meisten Naturforscher bis vor Kurzem so sehr überzeugt, dass sie die Angaben über Jungfernzeugung bei einzelnen Thierarten ungläubig aufnahmen, weil sie in ihnen einen Verstoss gegen ein Naturgesetz erblickten. Und in der That kann es ja für die Säugethiere und für die meisten anderen Organismen als ein Naturgesetz bezeichnet werden, dass ihre männlichen und weiblichen Geschlechtszellen für sich allein absolut entwicklungsunfähig sind. Eine Säugethierart würde unfehlbar aussterben, wenn ihre männlichen und weiblichen Individuen sich nicht zum Zeugungsakt verbänden. Trotzdem kann es nicht als ein allgemeines Naturgesetz bezeichnet werden, dass die Eier ohne Befruchtung auch stets entwicklungsunfähig sind.
Sowohl im Pflanzenreich wie im Thierreich kommen zahlreiche Fälle vor, dass in besonderen Geschlechtsorganen Zellen gebildet werden, welche ihrer ganzen Anlage nach ursprünglich bestimmt waren, sich als Eier durch Befruchtung zu entwickeln, welche aber die Befruchtungsbedürftigkeit nachträglich verloren haben und sich in Folge dessen ganz wie vegetative Fortpflanzungszellen, wie Sporen, verhalten.
Eine höhere Alge, die Chara crinita, findet sich im ganzen nördlichen Europa nur in weiblichen Exemplaren. Trotzdem werden in ihren Oogonien Eier gebildet, die sich auch ohne Befruchtung zu normalen, keimfähigen Früchten entwickeln.
Noch lehrreicher sind die Fälle von Parthenogenese im Thierreich. Sie sind namentlich bei kleinen Thieren aus dem Stamm der Arthropoden, bei Rotatorien, Aphiden, Daphnoiden, Lepidopteren etc. beobachtet worden. Dieselben Weibchen bringen zu gewissen Zeiten in ihrem Eierstock nur Eier hervor, welche sich ohne Befruchtung entwickeln, und zu anderer Zeit wieder Eier, welche der Befruchtung bedürfen. Beide physiologisch so verschiedenen Eier unterscheiden sich gewöhnlich auch in ihrem Aussehen. Die parthenogenetischen Eier sind ausserordentlich klein und dotterarm und werden demgemäss in grösserer Zahl und in kurzer Zeit entwickelt. Die befruchtungsbedürftigen Eier dagegen übertreffen sie um ein Vielfaches an Grösse und Dotterreichthum und brauchen längere Zeit zu ihrer Entwicklung. Da die ersteren allein im Sommer, die letzteren hauptsächlich bei Beginn der kalten Jahreszeit gebildet werden, hat man sie auch als Sommer- und Wintereier unterschieden. Letztere heissen auch Dauereier, da sie nach der Befruchtung eine längere Ruheperiode durchmachen müssen, während die Sommereier immer sofort wieder in den Entwicklungsprocess eintreten (Subitaneier).
Eine Beziehung zu äusseren Bedingungen ist bei der Entwicklung der parthenogenetischen Sommereier und der befruchtungsbedürftigen Wintereier unverkennbar. Bei den Aphiden begünstigt reichliche Ernährung die Bildung von Sommereiern, während Nahrungsbeschränkung die Erzeugung befruchtungsbedürftiger Eier veranlasst. Auch bei den Daphnoiden bestehen augenscheinlich Beziehungen zu den äussern Lebensbedingungen, wenn auch die einzelnen Factoren sich experimentell weniger leicht feststellen lassen. Es geht dies schon daraus hervor, dass bei den einzelnen Arten der Daphnoiden, je nach den Lebensbedingungen, unter denen sie sich befinden, der Generationscyclus ein verschiedenes Aussehen gewinnt.
Bewohner kleiner Pfützen, die leicht austrocknen, bringen nur eine oder wenige Generationen von Weibchen hervor, die sich auf ungeschlechtlichem Wege vermehren, dann werden schon befruchtungsbedürftige Eier erzeugt, so dass im Laufe eines Jahres mehrere Zeugungskreise (bestehend aus Jungfernweibchen und Geschlechtsthieren) aufeinander folgen. See- und Meerbewohner dagegen erzeugen eine lange Reihe von Jungfernweibchen, ehe es gegen Ende der warmen Jahreszeit zur Ablage von befruchtungsbedürftigen Dauereiern kommt. Ein Zeugungskreis füllt daher hier ein ganzes Jahr aus. (Polycyklische und monocyklische Arten von Weismann.)
Weismann (VII. 39), der den Gegenstand einer sehr eingehenden Prüfung unterworfen hat, bemerkt, „dass ein- und zweigeschlechtliche Generationen in verschiedener Weise bei den Daphnoiden miteinander abwechseln und dass der Modus ihres Wechselns in auffallender Beziehung zu den äusseren Lebensverhältnissen steht. Je nachdem Vernichtungsursachen (Kälte, Austrocknen u. s. w.) mehrmals im Jahre oder nur einmal oder gar nicht die Colonien einer Art heimsuchen, finden wir Daphnoiden mit mehrfachem Cyclus innerhalb eines Jahres oder mit einem Cyclus oder schliesslich sogar Arten, welche gar keinen Generationscyclus mehr erkennen lassen, und wir können danach polycyklische, monocyklische und acyklische Arten unterscheiden“.
Bei manchen Arten, die häufig wechselnden Bedingungen ausgesetzt sind, beobachtet man, dass von den im Eierstock sich entwickelnden Eiern einige sich zu Sommereiern ausbilden, während andere den Ansatz machen, zu Wintereiern zu werden. Es findet nach einem Ausspruch von Weismann im Körper der Weibchen „gewissermaassen ein Kampf statt zwischen der Tendenz zur Bildung von Dauereiern und derjenigen zur Bildung von Sommereiern.“
So kann man namentlich bei Daphnia pulex zwischen mehreren Sommereiern öfters die Anlage eines Dauereies im Ovarium erkennen, welche einige Tage wächst, sogar beginnt, den feinkörnigen, charakteristischen Dotter in sich abzulagern, dann aber in der Entwicklung stille steht, um sich sodann allmählich aufzulösen und vollständig zu verschwinden. Wenn Wintereier entwickelt worden sind, dieselben aber in Folge der Abwesenheit von Männchen nicht befruchtet werden können, so zerfallen sie nach einiger Zeit, und es kommt jetzt wieder zur Entstehung von Sommereiern.
Wie erklärt es sich nun, dass von Eiern, die in demselben Keimstock nacheinander entstehen, die einen der Befruchtung bedürfen, die anderen nicht? Weismann (VII. 40), Blochmann (VII. 44), Platner (VII. 47) und Andere haben die sehr interessante Entdeckung gemacht, dass in der Bildung der Polzellen (siehe darüber Seite 189) ein wichtiger und ziemlich durchgreifender Unterschied zwischen parthenogenetischen und befruchtungsbedürftigen Eiern besteht. Während nämlich bei letzteren zwei Polzellen wie gewöhnlich abgeschnürt werden, unterbleibt bei ersteren die Entwicklung der zweiten Polzelle und in Folge dessen auch die mit diesem Vorgang sonst verbundene Reduction der Kernsubstanz. Der Eikern des Sommereies der Daphnoiden z. B. besitzt daher auch ohne Befruchtung die ganze Nucleinmasse eines Normalkerns.
Es ist aber leicht einzusehen, dass durch dies interessante Verhalten das Wesen der Parthenogenese selbst in keiner Weise erklärt wird. Denn das Sommerei hat ja die Neigung, sich ohne Befruchtung zu entwickeln, schon ehe es zur Bildung der Polzellen schreitet, wie aus der geringen Ansammlung des Dotters, der abweichenden Beschaffenheit der Hüllen etc. hervorgeht. Das Ei wird nicht dadurch parthenogenetisch, weil es die zweite Polzelle nicht bildet, sondern weil es schon für parthenogenetische Entwicklung bestimmt ist, bildet es die zweite Polzelle nicht; es bildet sie nicht, weil unter diesen Verhältnissen eine Reduction der Kernmasse, die ja eine nachfolgende Befruchtung zur Voraussetzung hat, keinen Zweck mehr hat.
Auf dem Gebiet der Parthenogenese sind noch manche eigenthümliche Erscheinungen beobachtet worden, deren genaueres Studium wahrscheinlich zur Klärung dieser und jener Frage noch Manches beitragen wird. Eine solche Erscheinung, deren Tragweite zur Zeit noch nicht übersehen werden kann, ist die Thatsache, dass der Vorbereitungsprocess für die Befruchtung sogar dann, wenn er schon weiter als bis zur Bildung der ersten Polzelle geschritten ist, wieder rückgängig gemacht werden kann.
Bei manchen Thieren machen die Eier, wenn sie nicht zu normaler Zeit befruchtet werden, gewissermaassen noch einen Ansatz zu einer parthenogenetischen Entwicklung. Von den Eiern mancher Würmer, einzelner Arthropoden, Echinodermen, ja selbst Wirbelthiere (Vögel) werden Angaben gemacht, dass sie auch bei Abwesenheit von männlichem Samen sich zu furchen, eventuell selbst Keimblätter zu bilden beginnen, dann aber in ihrer Entwicklung still stehen bleiben und absterben. Abnorme, äussere Verhältnisse scheinen das Zustandekommen solcher Parthenogenese in einzelnen Fällen zu begünstigen, wie z. B. bei Asteracanthion. In derartigen Fällen ist nun von Boveri bei Nematoden und bei Pterotrachea, von mir bei Asteracanthion folgender bemerkenswerther Vorgang bei der Entstehung der Polzellen beobachtet worden.
Nach der Abschnürung der ersten Polzelle ergänzt sich die im Ei zurückgebliebene Spindelhälfte wieder zu einer Vollspindel, als ob jetzt noch die zweite Polzelle abgeschnürt werden soll. Trotzdem unterbleibt ihre Bildung: denn aus der zweiten Spindel gehen durch Theilung nur zwei Kerne hervor, die im Ei selbst bleiben. Hier verschmelzen sie nach einiger Zeit, indem sie sich nach der Mitte des Dotters hin bewegen, nachträglich wieder miteinander und liefern so gewissermaassen durch eine Selbstbefruchtung wieder einen Kern, durch welchen die bald nachfolgenden, parthenogenetischen Processe eingeleitet werden. Es wird hier also die zweite Theilung, welche die Reduction der Kernmasse und eine nachfolgende Befruchtung zum Zweck hat, wieder rückgängig gemacht. Dass hierdurch kein ausreichender Ersatz für den Ausfall der Befruchtung geschaffen ist, lehrt der weitere Verlauf des in Scene gesetzten, parthenogenetischen Entwicklungsprocesses, nämlich das mehr oder minder früh erfolgende Absterben des Keimes.
Aus dem Umstand, dass bei parthenogenetischer Entwicklung die Bildung der zweiten Polzelle unterbleibt oder wieder rückgängig gemacht wird, könnte man den Schluss ziehen, dass eine Entwicklung in allen Fällen unmöglich gemacht sei, wo sich schon die Reduction der Kernmasse auf die Hälfte des Normalmaasses vollzogen habe und dass sie dann nur durch Befruchtung wieder hervorgerufen werden könne.
Zur Zeit kann auch dieser Schluss, der vielleicht etwas Wahres in sich schliesst, nicht als ein allgemein gültiger bezeichnet werden. Denn von Platner (VII. 47), Blochmann (VII. 46) und Henking (VII. 17) werden Beobachtungen mitgetheilt, dass Eier von gewissen Arthropoden (Liparis dispar, Bienen), trotzdem sie wie befruchtungsbedürftige Eier zwei Polzellen geliefert haben, sich doch auf parthenogenetischem Wege zu normalen Thieren entwickeln. Allerdings ist in diesen Fällen eine genauere Feststellung des Sachverhalts mit Rücksicht auf die Zahl der Kernsegmente noch wünschenswerth.
Principiell muss jedenfalls die Möglichkeit zugegeben werden, dass Eier, die nach Bildung zweier Polzellen reducirte Kerne enthalten, sich doch noch parthenogenetisch weiter entwickeln können. Denn an Nucleïnmasse reducirte Kerne haben keineswegs ihr Theilvermögen verloren, wie man leicht glauben könnte. Besonders schlagend beweist dies ein von Richard Hertwig und mir (VI. 38, 32) an den Eiern der Seeigel ausgeführtes Experiment.
Man kann durch kräftiges Schütteln die Eier von Seeigeln in kleine, kernlose Stücke zerlegen, die sich abrunden und während längerer Zeit noch Lebensfähigkeit aufweisen. Die Stücke lassen sich durch Samen befruchten. Hierbei konnte regelmässig festgestellt werden, dass der Samenkern oder, was noch häufiger der Fall war, die in Mehrzahl eingedrungenen Samenkerne sich zu kleinen, typisch gebauten Kernspindeln mit zwei Strahlungen an ihren Polen umwandelten. Indem hierauf der Samenkern sich in Tochterkerne theilte, die sich ihrerseits wieder durch indirecte Theilung vermehrten, zerfiel das Eifragment in einen Haufen von vielen, kleinen Embryonalzellen. Boveri (VIII. 2) hat diese Entdeckung noch weiter verfolgt und ist zu dem wichtigen Ergebniss gelangt, dass sich aus einem grösseren, kernlosen, einfach befruchteten Eifragment sogar eine normale, nur entsprechend kleinere Larve züchten lässt.
b) Die Apogamie.
An die Parthenogenese lassen sich noch die ihr sehr nahe stehenden Erscheinungen anschliessen, welche de Bary (VII. 2) unter dem Namen Apogamie zusammengefasst hat.
Apogamie wurde bei einigen Farnkräutern beobachtet. Bei denselben findet bekanntlich eine Entwicklung mit Generationswechsel statt. Aus vegetativen Fortpflanzungszellen, den Sporen, keimen kleinste Pflänzchen, die Prothallien, hervor, die bestimmt sind, männliche und weibliche Geschlechtsorgane und aus letzteren Eier zu bilden. Wenn die Eier befruchtet werden, liefern sie wieder auf vegetativem Wege ein sich fortpflanzendes Farnkraut.
Bei Pteris cretica und Asplenium filix femina cristatum und falcatum ist nun der sonst so constante Generationswechsel durchbrochen. Entweder erzeugen die Prothallien dieser drei Arten überhaupt keine Geschlechtsorgane oder nur solche, die nicht mehr in Function treten, also rudimentär geworden sind; dagegen entsteht aus jedem Prothallium durch vegetative Sprossung ein neues Farnkraut.
Da es sich bei den drei Farnarten um Culturpflanzen handelt, so liegt die Vermuthung nahe, dass die Entwicklung befruchtungsbedürftiger Zellen durch die überreiche Ernährung unterdrückt und die vegetative Vermehrung begünstigt worden ist.
2) Die sexuelle Affinität.
Unter sexueller Affinität verstehe ich Wechselwirkungen, welche befruchtungsbedürftige Zellen verwandter Art aufeinander ausüben in der Weise, dass sie in bestimmte Nähe zu einander gebracht, sich anziehen, sich verbinden und in eins verschmelzen, wie zwei chemische Körper, zwischen denen nicht gesättigte, chemische Affinitäten bestehen. Wenn beide Geschlechtszellen beweglich sind, so stürzen beide aufeinander zu; wenn die eine Zelle als Ei unbeweglich geworden ist, so wird die wechselseitige Anziehung sich in der Bewegungsrichtung des Samenfadens besonders bemerkbar machen. Aber auch nach der Verschmelzung der beiden Zellen wirkt die sexuelle Affinität noch weiter und äussert sich in der Anziehung, welche Ei- und Samenkern, mit ihren Centralkörperchen auf einander ausüben und zu den früher beschriebenen Aneinanderlagerungen und Verschmelzungen führen.
Es bleibt nun zweierlei in diesem Abschnitt an Beispielen zu beweisen, erstens, dass zwischen befruchtungsbedürftigen Zellen überhaupt Wechselwirkungen bestehen, welche mit dem Namen sexuelle Affinität bezeichnet werden können, und zweitens, dass diese Affinität nur zwischen Zellen bestimmter Art in Wirksamkeit tritt, woran sich die Frage schliesst, welcher Art die befruchtungsbedürftigen Zellen sein müssen.
a) Die sexuelle Affinität im Allgemeinen.
Dass Geschlechtszellen auf eine gewisse Entfernung hin eine deutlich nachweisbare, eigenartige Einwirkung aufeinander ausüben, geht aus zahlreichen Mittheilungen zuverlässiger Beobachter hervor. Ich beschränke mich auf einige besonders lehrreiche Fälle, welche von Falkenberg, de Bary, Engelmann, Juranyi, Fol beschrieben worden sind.
Falkenberg (VII. 10) hat den Befruchtungsvorgang an einer niederen Algengattung Cutleria verfolgt. Zu empfängnissfähigen, zur Ruhe gekommenen Eiern von Cutleria adspersa setzte er lebhaft schwärmende Samenfäden von der nahe verwandten und äusserlich nur durch geringe Differenzen unterscheidbaren Cutleria multifida hinzu. „In solchen Fällen sah man die Spermatozoïden unter dem Mikroskop ziellos umherirren und endlich absterben, ohne an den Eiern der verwandten Algenspecies den Befruchtungsakt vollzogen zu haben. Freilich blieben einzelne Spermatozoïden, welche zufällig auf die ruhenden Eier stiessen, momentan an diesen hängen, aber nur um sich eben so schnell wieder von ihnen loszureissen. Ganz anders aber wurde das Bild unter dem Mikroskop, sobald man auf derartigen Präparaten den Spermatozoïden auch nur ein einziges befruchtungsfähiges Ei der gleichen Species hinzusetzte. Wenige Augenblicke genügten, um sämmtliche Spermatozoïden von allen Seiten her um dies eine Ei zu versammeln, selbst wenn dasselbe mehrere Centimeter von der Hauptmasse der Spermatozoïden entfernt lag.“ Dabei überwanden sie selbst die Kraft, welche sie sonst dem einfallenden Licht entgegenführt und wurden befähigt, die dem Lichteinfall entgegengesetzte Richtung einzuschlagen.
Falkenberg zieht aus seinen Beobachtungen den Schluss, dass die Anziehungskraft zwischen den Eiern und Spermatozoïden von Cutleria sich auf verhältnissmässig bedeutende Distanzen geltend macht und in ihnen selbst ihren Sitz haben muss, dass auf der anderen Seite aber diese Anziehungskraft nur zwischen den Geschlechtszellen derselben Species existirt.
Bei Untersuchung der geschlechtlichen Fortpflanzung von Peronosporeen hat de Bary (VII. 2b) beobachtet, dass in durcheinander gewachsenen Thallusfäden sich zunächst die Oogonien anlegen. Etwas später entstehen die Antheridien, aber stets nur in unmittelbarer Nachbarschaft der Eizelle und zwar sehr häufig aus Thallusfäden, die mit dem Faden, aus dem das Oogonium abstammt, selbst keinen Zusammenhang haben. De Bary schliesst hieraus, dass vom Oogonium auf eine geringe Distanz eine Wirkung ausgehen müsse, durch welche der Thallusfaden zur Bildung eines Antheridiums veranlasst werden müsse. Besonders aber erblickt er eine Fernwirkung darin, dass der das Antheridium liefernde Schlauch bei seiner Annäherung an das Oogonium von seiner Wachsthumsrichtung abgelenkt wird, sich mit seinem Ende ihm zuneigt und sich ihm dann dicht anlegt. De Bary schätzt die Distanz, in welcher das Oogonium ablenkend wirkt, auf ungefähr die Grösse des Oogoniumdurchmessers und bemerkt dazu: „Die beschriebene Ablenkung der Nebenäste lässt sich auf keine andere als in den besonderen Eigenschaften des Oogoniums selbst gelegene Ursache zurückführen“.
Nicht minder interessant und bemerkenswerth sind die Angaben, die Engelmann (VII. 9) über die Conjugation von Vorticella mikrostoma gemacht hat. Bei dieser Art bilden sich durch Knospung (siehe Seite 183) kleine, männliche Schwärmzellen, die dann wie Samenfäden die grossen weiblichen Individuen befruchten (Seite 217). In vier Versuchen glückte es Engelmann, die Knospe nach ihrer Abtrennung von der Mutterzelle zu verfolgen, bis sie sich mit einem anderen Individuum verbunden hatte.
„Anfangs schwärmte die Knospe“, so lautet die Darstellung von Engelmann, „mit ziemlich constanter Geschwindigkeit (etwa 0,6–1 mm in der Secunde) und immer um ihre Längsaxe rotirend, meist in ziemlich gerader Richtung durch den Tropfen. Dies dauerte 5–10 Minuten oder noch länger, ohne dass etwas Besonderes geschehen wäre. Dann änderte sich plötzlich die Scene. Zufällig in die Nähe einer festsitzenden Vorticelle gerathen, änderte die Knospe, zuweilen wie mit einem Ruck, ihre Richtung und nahte nun, tanzend wie ein Schmetterling, der um eine Blume spielt, der Vorticelle, glitt wie tastend und dabei immer um die eigene Längsaxe rotirend auf ihr hin und her. Nachdem dies Spiel minutenlang gedauert hatte, auch wohl nacheinander bei verschiedenen festsitzenden Individuen wiederholt worden war, setzte sich die Knospe endlich fest, und zwar meist am aboralen Ende, nahe dem Stiel. Nach wenigen Minuten war die Verschmelzung schon merkbar im Gange.“
„Ein in physiologischer und speciell psychophysiologischer Beziehung noch merkwürdigeres Schauspiel,“ bemerkt Engelmann im Anschluss an die oben gegebene Schilderung, „beobachtete ich ein anderes Mal. Eine frei schwärmende Knospe kreuzte die Bahn einer mit grosser Geschwindigkeit durch den Tropfen jagenden, grossen Vorticelle, die auf die gewöhnliche Weise ihren Stiel verlassen hatte. Im Augenblicke der Begegnung — Berührung fand inzwischen durchaus nicht statt — änderte die Knospe plötzlich ihre Richtung und folgte der Vorticelle mit sehr grosser Geschwindigkeit. Es entwickelte sich eine förmliche Jagd, die etwa 5 Secunden dauerte. Die Knospe blieb während dieser Zeit nur etwa ¹⁄₁₅ mm hinter der Vorticelle, holte sie jedoch nicht ein, sondern verlor sie, als dieselbe eine plötzliche Seitenschwenkung machte. Hierauf setzte die Knospe mit der anfänglichen, geringeren Geschwindigkeit ihren eigenen Weg fort.“
Eine Einwirkung auf Distanz ist auch bei den Thieren durch Fol (VI. 19a) und zwar an Seesterneiern beobachtet worden. Dieselben sind von einer dünnen Gallerthülle umgeben. Sowie neue Samenfäden derselben Art sich der Oberfläche der Gallerte nähern, übt der am weitesten vorgedrungene eine deutlich wahrnehmbare Einwirkung auf den Dotter aus (Fig. 160). Die hyaline Rindenschicht desselben erhebt sich als ein kleiner Fortsatz und streckt sich als Empfängnisshügel (cône d’attraction) dem Samenfaden entgegen. Bald ist er zart und in Form einer Nadel oder einer Zunge ausgezogen, bald ist er breit und kurz. Wenn die Berührung mit dem Samenfaden hergestellt ist, wird der Empfängnisshügel eingezogen.
Fol hält die Beobachtung für ganz sicher und bemerkt zu ihr: „Wenn die Thatsache selbst, dass der Samenfaden auf den Dotter, von welchem er noch durch einen relativ beträchtlichen Zwischenraum getrennt ist, eine Wirkung ausübt, unbestritten ist, so ist doch der Mechanismus dieser Fernwirkung (Action à distance) nichts weniger als klar.“
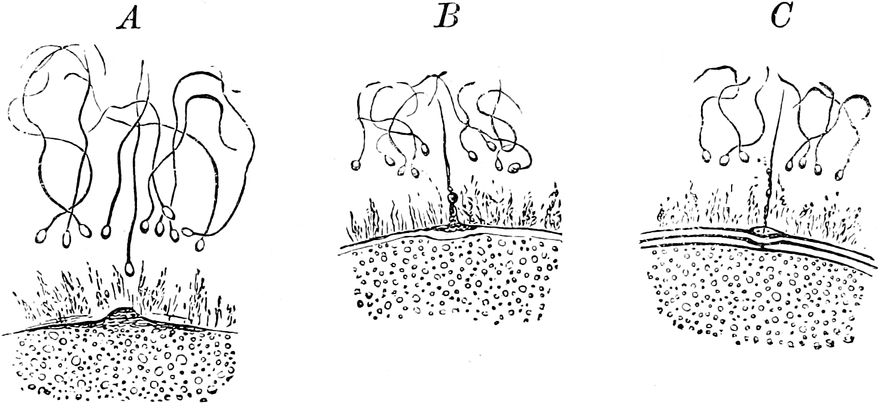
Fig. 160.
A
,
B
,
C
Kleinere Abschnitte von Eiern von Asterias glacialis