NEUNTES CAPITEL. Die Zelle als Anlage eines Organismus (Vererbungstheorieen).
Reading edition
Schon aus der Fähigkeit der Zelle, Bewegungen auszuführen und auf die verschiedensten äussern Einwirkungen, seien es thermische oder optische oder chemische oder mechanische, in ganz gesetzmässiger Weise zu reagiren, ferner aus der Fähigkeit complicirte, chemische Processe auszuführen und sehr zahlreiche, mit besonderer Structur versehene Substanzen zu bilden, mussten wir schließen, dass die Zelle ein hoch zusammengesetzter Körper, aufgebaut aus zahlreichen kleinsten, verschiedenartigen Theilchen, also selbst gewissermaassen ein kleiner Elementarorganismus ist.
Noch mehr wird uns dieser Gedanke aufgedrängt, wenn wir sehen, wie die Ei- und Samenzellen durch ihre Vereinigung die Grundlage bilden für die Entwicklung eines Organismus, welcher im Grossen und Ganzen die Eigenschaften der zeugenden Eltern und oft auch geringfügige, individuelle Züge derselben reproducirt. Wir müssen hieraus schliessen, dass in der Ei- und Samenzelle alle Bedingungen enthalten sein müssen, welche erforderlich sind, um das Endproduct des Entwicklungsprocesses schliesslich zu Stande kommen zu lassen. Unserer Wahrnehmung entziehen sich allerdings diese Bedingungen; dass dieselben aber nichts weniger als einfacher Art sein werden, geht schon aus der ausserordentlichen Zusammensetzung hervor, welche das Endproduct der Entwicklung bei den höchsten Organismen erreicht.
Die Geschlechtszellen müssen daher zahlreiche, uns verborgene Eigenschaften und Merkmale besitzen, durch deren Vorhandensein die Entstehung des Endproducts ermöglicht wird. Solche verborgenen oder latenten Eigenschaften, die erst durch den Entwicklungsprocess allmählich offenbar werden, nennt man Anlagen. In der Gesammtheit der Anlagen ist der entwickelte Organismus gewissermaassen vorgebildet oder potentiell enthalten.
Nun gleichen sich auf einem gewissen Stadium ihrer Entwicklung alle Organismen ausserordentlich, insofern sie einfache Zellen sind. Die Eier des Menschen, eines Nagethiers, eines Wiederkäuers, ja selbst mancher wirbellosen Thiere sind nicht wesentlich voneinander verschieden. Ihre Unterschiede sind ausserordentlich viel geringer als die Unterschiede zwischen dem Ei und der Samenzelle ein und desselben Organismus.
Solche formalen Aehnlichkeiten und formalen Unterschiede haben aber wenig zu bedeuten, wenn wir tiefer auf den Grund der Sache gehen. Denn so wie Mensch, Nagethier, Wiederkäuer und wirbelloses Thier in ihrer Organisation mehr oder minder tiefgreifende, uns äusserlich wahrnehmbare Unterschiede darbieten, so müssen auch die von ihnen abstammenden Geschlechtszellen, insofern sie die Anlagen des späteren ausgebildeten Zustandes darstellen, durch die Beschaffenheit der Anlagen in entsprechender Weise von einander unterschieden sein, nur dass die unterscheidenden Momente jetzt auf einem unserer Wahrnehmung noch verschlossenen Gebiete liegen. Auf der anderen Seite müssen Ei- und Samenzelle ein und desselben Organismus, die äusserlich so sehr ungleich aussehen, in ihren wesentlichen Eigenschaften, durch welche die Anlage des ausgebildeten Geschöpfs repräsentiert wird, nur in geringem Grade voneinander abweichen.
Treffend bemerkt Nägeli (IX. 20): „Die Eizellen enthalten alle wesentlichen Merkmale ebenso gut, wie der ausgebildete Organismus, und als Eizellen unterscheiden sich die Organismen nicht minder voneinander, als im entwickelten Zustande. In dem Hühnerei ist die Species ebenso vollständig enthalten, als im Huhn, und das Hühnerei ist von dem Froschei eben so weit verschieden, als das Huhn vom Frosch.“
Was von den Eiern gilt, dasselbe gilt nicht minder auch von jeder einzelnen Zelle und jedem Zellencomplex, welcher als Spore und Knospe vom Mutterorganismus abgelöst, im Stande ist, den letzteren wieder zu erzeugen. Auch sie müssen alle wesentlichen Eigenschaften des Ganzen als Anlagen in einem unserer Wahrnehmung entzogenen Zustand enthalten.
Welche Vorstellungen können wir uns zur Zeit von diesen unsichtbaren Eigenschaften der Zellen bilden, durch welche sie die Anlage für einen zusammengesetzten Organismus abgeben? In welchem Verhältniss stehen Anlage und ausgebildeter Zustand zu einander?
Bei der Beantwortung dieser Fragen stehen wir vor den allerschwierigsten Problemen, welche die Lehre vom Leben darbietet. Mit ihnen haben sich Naturforscher und Denker zu den verschiedensten Zeiten beschäftigt und ihre Denkergebnisse in Hypothesen zusammengefasst, welche die Forschung in manchen Zeiträumen in nachhaltiger Weise beeinflusst haben. Auf die historisch wichtigsten derselben in Kürze einzugehen, dürfte sowohl von allgemeinem Interesse als auch eine passende Einleitung für den Versuch sein, die Anschauungen zusammenzustellen, zu denen die moderne Naturforschung hinleitet.
I. Geschichte der älteren Entwicklungstheorieen.
Zwei bedeutende Theorien haben sich in der Wissenschaft bis in den Anfang unseres Jahrhunderts hinein schroff und unvermittelt gegenüber gestanden, die Theorie der Präformation oder Evolution und die Theorie der Epigenese.
Der Präformationstheorie huldigten viele der Geistesheroen des 17. und 18. Jahrhunderts, Swammerdam, Malpighi und Leeuwenhoek, Haller, Bonnet (IX. 3) und Spallanzani (vgl. His. IX. 14). Sie waren der Ansicht, dass die Keime in ihrem Bau mit den erwachsenen Organismen auf das Vollständigste übereinstimmen und daher von Anfang an dieselben Organe in derselben Lage und Verbindung wie diese, nur in einem ausserordentlich viel kleineren Zustand besitzen sollten. Da es nun aber mit den damaligen Vergrösserungsgläsern nicht möglich war, in den Eiern am Anfang ihrer Entwicklung die vorausgesetzten Organe wirklich zu sehen und nachzuweisen, nahm man zu der Hypothese seine Zuflucht, dass die einzelnen Theile, wie Nervensystem, Drüsen, Knochen etc. nicht nur in einem sehr kleinen, sondern auch in einem durchsichtigen Zustande vorhanden sein müssen.
Um sich den Vorgang verständlicher zu machen, wies man als erläuternde Beispiele auf die Entstehung des Schmetterlings aus der Puppe und namentlich auf die Entstehung einer Pflanzenblüthe aus ihrer Knospe hin.
Wie in einer kleinen Knospe von den grünen, noch fest zusammengeschlossenen Hüllblättern doch bereits schon alle Blüthentheile, wie die Staubfäden und die gefärbten Kelchblätter, eingehüllt werden, wie diese Theile im Verborgenen wachsen und sich dann plötzlich zur Blüthe entfalten, wobei alle bis dahin verborgenen Theile enthüllt werden, so sollten auch in der Thierentwicklung die bereits vorhandenen, aber kleinen und durchsichtigen Theile wachsen, sich allmählich enthüllen und unserem Auge erkennbar werden.
Daher der alte Name „Theorie der Evolution oder Entfaltung“, an dessen Stelle man neuerdings die noch zutreffendere und klarere Bezeichnung „Präformationstheorie“ eingeführt hat. Denn das Eigentümliche dieser Lehre ist, dass sich in keinem Augenblick der Entwicklung etwas Neues bildet, vielmehr jeder Theil von Anfang an vorhanden oder präformirt ist, dass also das eigentliche Wesen der Entwicklung, das Werden, in Abrede gestellt wird. „Es giebt kein Werden,“ heisst es in den Elementen der Physiologie von Haller: „Kein Theil im Thierkörper ist vor dem anderen gemacht worden, und alle sind zugleich erschaffen.“
In schroffem Gegensatz zur Präformationslehre steht die Theorie der Epigenese, welche ihren Hauptvertreter in der Mitte des 18. Jahrhunderts in Caspar Friedrich Wolff (IX. 36) gefunden hat. Derselbe stellte in seiner bahnbrechend gewordenen Doctordissertation „Theoria Generationis“ im Jahre 1759 (deutsche Ausgabe 1764) dem damals allmächtigen Dogma der Präformation den wissenschaftlichen Grundsatz entgegen: was man nicht mit seinen Sinnen wahrnehmen könne, sei auch nicht im Keime präformirt vorhanden. Am Anfang sei der Keim nichts Anderes als ein unorganisirter, von den Geschlechtsorganen der Eltern ausgeschiedener Stoff, welcher sich erst in Folge der Befruchtung während des Entwicklungsprocesses allmählich organisire.
Aus dem zunächst ungesonderten Keimstoffe lässt Wolff sich nacheinander die einzelnen Organe des Körpers sondern, welchen Process er in einzelnen Fällen bereits durch Beobachtung genauer festzustellen suchte. So zeigte er, wie sich aus dem Keimstoff allmählich einzelne Pflanzenorgane sondern und dabei in ihrer Form Metamorphosen eingehen; er lehrte, dass sich der Darmkanal des Hühnchens aus einer blattförmigen Anlage entwickelt.
Indem Wolff an der Hand von genauen Untersuchungen an Stelle vorgefasster Meinungen der Beobachtung und sinnlichen Wahrnehmung zu ihrem Rechte verhalf, hat er den Grundstein gelegt zu dem stolzen Bau, zu dem sich in unserem Jahrhundert die Entwicklungslehre auf Grund von Beobachtungen allmählich gestaltet hat.
Vergleichen wir jetzt beide Theorieen prüfend miteinander, so lassen uns beide in ihrer älteren Fassung unbefriedigt. Beide haben ihre Achillesferse, an der sie verwundbar sind.
Was zunächst die Präformationstheorie anbetrifft, so trug sie einen Angriffspunkt zu einer auf dem Standpunkt der Evolutionisten unlösbaren, wissenschaftlichen Fehde in sich, insofern sich bei den höheren Organismen ein jedes Individuum durch das Zusammenwirken zweier getrennter Geschlechter entwickelt. Als man daher ausser dem thierischen Ei später auch mit den Samenfäden durch Leeuwenhoeks Entdeckung (1677) bekannt geworden war, erhob sich alsbald die lebhaft discutirte Streitfrage, ob das Ei oder ob der Samenfaden der vorgebildete Keim sei.
Ein Jahrhundert lang standen sich die feindlichen Schulen der Ovisten und der Animalculisten entgegen. Wie die Ovisten, Spallanzani z. B., das unbefruchtete Ei des Frosches geradezu als ein kleines Fröschchen bezeichneten und den Samen nur ein Reizmittel sein liessen, das die Bethätigung des Lebens und das Wachsthum anrege, so glaubten Vertreter der Animalculisten bei Zuhilfenahme der damaligen Vergrösserungsgläser die Samenfäden auch wirklich mit einem Kopf, mit Armen und mit Beinen ausgestattet zu sehen. Sie erblickten im Ei nur den geeigneten Nährboden, welcher für das Wachsthum des Samenfadens erforderlich sei.
Aber auch ausserdem musste die Präformationstheorie bei einer ins Einzelne genauer durchgeführten Durchbildung zu sehr bedenklichen Consequenzen führen. Eine solche Consequenz, die auch die Physiologen Haller und Spallanzani nicht glaubten umgehen zu können, ist der Satz, dass in einem Keim auch die Keime für alle späteren Geschöpfe schon angelegt oder eingeschlossen sein müssen. Dieser Satz ist die nothwendige Folgerung aus der Thatsache, dass sich die Thiergeschlechter in ununterbrochener Reihenfolge auseinander entwickeln. Die Präformationstheorie hat so aus ihrem Schoosse als natürliche Frucht die „Einschachtelungstheorie“ erzeugen müssen oder wie sich Blumenbach (IX. 2) scherzend ausdrückt: die Lehre von den „eingewickelten Keimen“. Im Eifer ist man sogar so weit gegangen, zu berechnen, wie viel Menschenkeime im Eierstock der Stammmutter Eva zum mindesten eingeschachtelt gewesen sind, wobei man damals auf die Zahl von 200,000 Millionen kam (Elemente der Physiologie von Haller).
Auf der anderen Seite führt aber auch die Theorie der Epigenese in der älteren Fassung bei einer tieferen Durchführung auf Schwierigkeiten. Denn in welcher Weise, so kann man fragen, vermag die Natur mit den uns bekannten Kräften aus einem unorganisirten Stoff in wenigen Tagen oder Wochen einen thierischen Organismus, ähnlich seinen Erzeugern, neu zu bilden? Hierüber vermag keine Lehre, welche den Organismus als eine vollständige Neuzeugung betrachtet, uns eine irgendwie annehmbare, zufriedenstellende Auskunft zu ertheilen.
Blumenbach (IX. 2) nahm daher seine Zuflucht zu einem besonderen „Nisus formativus“ oder „Bildungstrieb“, welcher die ungeformten väterlichen und mütterlichen Zeugungssäfte zur „Formation“, d. h. eine bestimmte Gestalt anzunehmen veranlasst und auch später dafür sorgt, dass Verstümmelungen wieder ersetzt werden. Aber mit der Annahme eines besonderen Bildungstriebes ist doch nicht viel mehr als ein leeres Wort für eine unbekannte Sache gewonnen.
Neue Grundlagen für die Aufstellung vervollkommneter Zeugungs- und Vererbungstheorieen wurden erst durch die Zellentheorie und ihre weitere Ausbildung von der Mitte unseres Jahrhunderts an allmählich geschaffen. Diese Grundlagen sind: erstens die Erkenntniss, dass Ei und Samenfaden einfache, vom Organismus zum Zweck der Fortpflanzung sich ablösende Zellen sind und dass die entwickelten Organismen selbst nichts Anderes sind als geordnete Verbindungen von ausserordentlich zahlreichen, zu verschiedenen Zwecken angepassten Zellen, entstanden durch vielmals wiederholte Theilung der befruchteten Eizelle. Eine zweite Grundlage ist die sich immer mehr Bahn brechende Vorstellung, dass die Zelle etwas ausserordentlich Complicirtes, d. h., dass sie selbst ein Elementarorganismus ist. Hierzu gesellt sich drittens die tiefere Erkenntniss des Befruchtungsvorganges, der Kernstructur und des Kerntheilungsprocesses, namentlich der Längsspaltung und Vertheilung der Kernsegmente, die Entdeckung der Verschmelzung des Ei- und Samenkerns, der Aequivalenz der männlichen und weiblichen Kernmasse und ihrer Vertheilung auf die Tochterzellen, der Einblick in die complicirten Processe der Ei- und Samenreife und der durch sie herbeigeführten Reduction der Kernsubstanz.
II. Neuere Zeugungs- und Entwicklungstheorieen.
Die neuen Zeugungstheorieen sind vor allen Dingen von Darwin (IX. 6), Spencer (IX. 26), und Nägeli (IX. 20), von mir (IX. 10–13) und Strasburger (IX. 27, 28), von Weismann (IX. 31–34) und de Vries (IX. 30) ausgearbeitet worden. In ihnen erscheint der schroffe Gegensatz, in welchem sich früher die Theorieen der Evolution und der Epigenese einander gegenüberstanden, in vieler Hinsicht vermittelt, so dass sie in einigen Beziehungen als eine Fortbildung evolutionistischer Ansichten, in anderen Beziehungen ebenso gut als eine tiefere Durchführung epigenetischer Ansichten bezeichnet werden können, wie der denkende Leser leicht herausfühlen wird. Von den alten aber unterscheiden sich die neuen Lehren, trotzdem sie nicht mehr als den Namen von Hypothesen verdienen, dadurch, dass sie sich auf einem reichen und wohl gesicherten Schatz zum Theil fundamentaler Thatsachen aufbauen.
Es würde mich zu weit führen, wollte ich hier eine gesonderte Darstellung der Ansichten der oben genannten Forscher geben, die trotz Uebereinstimmung in vielen wesentlichen Dingen in Einzelheiten doch wieder weit auseinandergehen. Ich werde mich daher auf eine kurze Wiedergabe dessen, was mir die Quintessenz der modernen Zeugungs- und Entwicklungstheorieen zu sein scheint, beschränken.
Alle die zahlreichen Eigenschaften, welche in dem entwickelten Organismus wahrgenommen werden, sind in den Geschlechtsproducten als Anlagen enthalten. Sie werden von dem Erzeuger wieder auf das Zeugungsproduct übertragen und können insofern als dessen Erbmasse (Idioplasma, Nägeli) bezeichnet werden. Jede Zeugung und jeder Entwicklungsakt ist daher keine Neubildung, keine Epigenesis, sondern eine Umbildung, eine Verwandlung einer Anlage oder einer mit potentiellen Kräften ausgestatteten Substanz in einen entwickelten Organismus, der seinerseits wieder Anlagen erzeugt, ähnlich der Anlage, aus der er selbst hervorgegangen ist.
Bezeichnen wir den ausgebildeten Organismus als einen Makrokosmus, so stellt im Gegensatz zu ihm die Erbmasse einen Mikrokosmus dar, zusammengesetzt aus zahlreichen, gesetzmässig angeordneten, verschiedenartigen Stofftheilchen, die mit ihren eigenen besonderen Kräften ausgerüstet Träger der erblichen Eigenschaften sind. Wie Pflanze und Thier sich zuweilen in Milliarden von Elementartheilen, in die Zellen, zerlegen lassen, so ist jede Zelle selbst wieder aus sehr zahlreichen, kleinen, hypothetischen Elementartheilchen aufgebaut.
Darwin, Spencer, Nägeli, de Vries haben ihren hypothetischen Einheiten verschiedene Namen beigelegt, obwohl sie im Wesentlichen unter denselben Aehnliches verstehen. Darwin (IX. 6) nennt sie in seiner provisorischen Hypothese der Pangenesis Keimchen oder Gemmulae, Spencer (IX. 26) spricht in seinen Principien der Biologie von physiologischen Einheiten, Nägeli (IX. 20) von Idioplasmatheilchen oder Micellgruppen und de Vries (IX. 30) in Anlehnung an Darwins Pangenesis von Pangenen.
Was sind denn nun aber diese kleineren Elementareinheiten der Zellen, für welche ich im Folgenden das Wort Idioblasten gebrauchen will, in Anlehnung an Nägeli, welcher über die uns beschäftigenden Fragen nach meiner Meinung wohl die scharfsinnigsten Erörterungen angestellt hat?
Bei der Beantwortung der Frage ist im Auge zu behalten, dass sich eine scharfe Definition für den Begriff zur Zeit nicht geben lässt, in der Weise wie die Chemie und Physik ihre Atome und Moleküle zu definiren vermag. Wir bewegen uns auf einem noch sehr dunklen Gebiet, etwa wie die Naturforscher des vorigen Jahrhunderts, als sie für den thierischen Körper einen Aufbau aus Elementareinheiten nachzuweisen versuchten. Naturgemäss wird die Gefahr, auf Abwege zu gerathen, um so grösser werden, je mehr man beim Ausbau einer solchen Hypothese auf das Specielle einzugehen versucht. Ich werde mich daher so weit als möglich nur an die allgemeinsten Eigenschaften zu halten suchen.
Die hypothetischen Idioblasten sind die kleinsten Stofftheilchen, in welche sich die Erbmasse oder das Idioplasma zerlegen lässt, und welche in ihm in grosser Zahl und verschiedener Qualität enthalten sind. Sie sind je nach ihrer verschiedenen stofflichen Natur die Träger besonderer Eigenschaften und rufen durch directe Wirkung oder durch verschiedenartig combinirtes Zusammenwirken die unzähligen, morphologischen und physiologischen Merkmale hervor, welche wir an der Organismenwelt wahrnehmen. Sie lassen sich, um mich zweier Bilder zu bedienen, einmal den Buchstaben des Alphabeths vergleichen, die gering an Zahl, doch durch ihre verschiedene Combination Wörter und durch Combination von Wörtern wieder Sätze von verschiedenartigstem Sinn bilden. Oder sie sind den Tönen vergleichbar, durch deren zeitliche Aufeinanderfolge und gleichzeitige Combination sich unendliche Harmonieen erzeugen lassen.
„Wie die Physik und die Chemie,“ bemerkt de Vries, „auf die Moleküle und die Atome zurückgehen, so haben die biologischen Wissenschaften zu diesen Einheiten durchzudringen, um aus ihren Verbindungen die Erscheinungen der lebenden Welt zu erklären.“
So denkt sich Nägeli „die Merkmale, Organe, Einrichtungen, Functionen, die alle uns nur in sehr zusammengesetzter Form wahrnehmbar sind, im Idioplasma in ihre wirklichen Elemente zerlegt.“ Als solche bezeichnet de Vries Stofftheilchen, welche das Vermögen besitzen, Chlorophyll oder Blumenfarbstoff, Gerbsäure oder ätherische Oele, und fügen wir weiter hinzu, Muskelsubstanz, Nervensubstanz etc. zu bilden.
Aehnliche Ideen sind in etwas anderer Fassung und von anderen Gesichtspunkten aus von Sachs (IX. 25) in seinem Aufsatz „Stoff und Form der Pflanzenorgane“ ausgesprochen worden, wenn er sagt: „Man muss ebensoviele specifische Bildungsstoffe annehmen, als verschiedene Organformen an einer Pflanze zu unterscheiden sind.“ Man muss sich vorstellen, dass „sehr kleine Quantitäten gewisser Stoffe jene Stoffmassen, mit denen sie gemischt sind, dazu bestimmen, in verschiedenen organischen Formen zu erstarren“.
Während wir uns nur unsicher zur Zeit ausdrücken können, wenn es sich darum handelt, die specifische Natur eines einzelnen Idioblasten anzugeben, können wir dagegen bestimmtere Schlüsse hinsichtlich einiger ihrer allgemeinen Eigenschaften ziehen.
Es lässt sich erstens leicht als eine Denknothwendigkeit erweisen, dass die hypothetischen Idioblasten das Vermögen besitzen müssen, gleich den höheren Elementareinheiten, den Zellen, sich durch Theilung zu vervielfältigen. Denn vom Ei erhält ja jede Theilhälfte und von dieser wieder jede folgende Tochterzelle Stofftheilchen zuertheilt, welche die Träger specifischer Eigenschaften sind; also muss eine Vermehrung derselben während des individuellen Entwicklungsprocesses stattfinden; sie müssen fortgesetzt theilbar sein und müssen daher auch das Vermögen eigenen Wachsthums besitzen, ohne welche fortgesetzte Theilbarkeit selbstverständlicher Weise nicht denkbar ist. Mit logischer Consequenz nehmen daher Darwin, Nägeli und de Vries Wachsthum und Theilbarkeit für ihre Keimchen, ihre Idioplasmatheilchen und ihre Pangene an.
Die Annahme der Theilbarkeit gestattet uns noch einen zweiten Schluss über die Natur der Idioblasten zu ziehen, den Schluss nämlich, dass sie ihrem Wesen nach mit den Atomen und Molekülen der Chemie und Physik nicht identisch sein können; denn die ersteren sind untheilbar, die letzteren zwar zerlegbar, aber nur in Theile, welche nicht mehr die Eigenschaften des Ganzen besitzen. Ein bestimmtes Eiweissmolekül kann nicht wachsen, ohne seine Natur zu verändern; denn wenn es sich neue Atomgruppen anlagert, tritt es in neue Verbindungen ein, wodurch sein früheres Wesen aufgehoben wird, und ebenso wenig kann es in zwei gleichartige Eiweissmoleküle zerfallen, da jede Theilung des Moleküls ungleichwerthige Atomgruppen liefert. Daher sind die Idioblasten nicht identisch mit den von Elsberg und Häckel (IX. 8b) angenommenen Plastidulen. Denn letztere besitzen nach Häckel einmal alle die physikalischen Eigenschaften, welche die Physik den Molekülen oder den zusammengesetzten Atomen überhaupt zuschreibt, ausserdem aber noch besondere Attribute, welche ihnen ausschliesslich eigenthümlich sind, nämlich „die Lebenseigenschaften, durch welche sich überhaupt das Lebendige vom Todten, das Organische vom Anorganischen unterscheidet“.
Unsere Einheiten, die Keimchen Darwins, die Pangene von de Vries, die physiologischen Einheiten von Spencer müssen somit zusammengesetztere Einheiten, wenigstens Molekülgruppen sein. In dieser Grundanschauung stimmen alle eben genannten Forscher überein. So bemerkt Spencer: „Es scheint nichts Anderes übrig zu bleiben, als anzunehmen, dass die chemischen Einheiten sich zu Einheiten unendlich viel complicirterer Art zusammenthun, als sie selbst sind, so complicirt sie auch sein mögen, und dass in jedem Organismus die durch eine solche weitere Verbindung hoch zusammengesetzter Moleküle erzeugten physiologischen Einheiten einen mehr oder weniger verschiedenen Charakter besitzen.“
Wenn wir uns auf den Standpunkt der früher besprochenen Nägeli’schen Hypothese von der Molekularstructur organisirter Körper stellen, so können wir uns mit Nägeli von der Beschaffenheit der Idioblasten folgende Vorstellung bilden. „Ebenso wenig wie Moleküle, können sie einzelne Micellen (krystallinische Molekülgruppen) sein, denn wenn diese auch als Gemenge von verschiedenen Albuminatmodificationen ungleiche Eigenschaften besässen, so würde ihnen doch die Fähigkeit, sich zu vermehren und neue gleiche Micellen zu bilden, mangeln. Wir finden alle Bedingungen für die Beschaffenheit der Keimchen bloss in unlöslichen und festverbundenen Gruppen von Albuminatmicellen; nur diese können vermöge ihrer ungleichen Anordnung alle erforderlichen Eigenschaften annehmen und vermittelst Einlagerung von Micellen in beliebigem Maasse wachsen und durch Zerfallen sich vermehren. Die Pangenesiskeimchen müssen also kleine Mengen von Idioplasma sein.“
An die vorstehende Erörterung lässt sich die Frage anknüpfen: welche Vorstellung können wir uns von der Grösse und Zahl der in einer Gesammtanlage enthaltenen Idioblasten machen?
Was die Grösse betrifft, so müssen jedenfalls die Idioblasten ausserordentlich klein sein, da in dem winzigen Samenfaden alle erblichen Anlagen eines hoch zusammengesetzten Organismus vorhanden sein müssen. Nägeli hat denn versucht, sich auf Grund von Berechnungen eine ungefähre Vorstellung über diesen wichtigen Punkt zu machen. Er geht von der Annahme aus, dass die hypothetische Formel der Chemiker mit 72 Atomen Kohlenstoff (C72H106N18SO22) nicht das Eiweissmolekül, sondern ein aus mehreren Molekülen krystallinisch gebautes Micell darstellt. Das absolute Gewicht desselben beträgt den trillionsten Theil von 3,53 mg. Das specifische Gewicht des trockenen Eiweisses ist 1,344. Daraus folgt, dass 1 Cubikmikromillimeter nahezu 400 Millionen Micellen einschliesst. Das Volum eines solchen Micells berechnet Nägeli auf Grund einiger weiterer Voraussetzungen auf 0,0000000021 C.-Mik. Unter der Voraussetzung ferner, dass die Micellen prismatisch und bloss durch zwei Schichten von Wassermolekülen überall getrennt sind, würden auf einem Flächenraum von 0,1 Q.-Mik. 25000 Micellen Platz finden. In einem Körperchen von der Grösse eines Samenfadens würden daher immerhin eine beträchtliche Menge gruppenweise vereinter Micellen oder Idioblasten Platz haben können. Nach dieser Richtung stösst die vorgetragene Theorie auf keine Schwierigkeiten.
Logische Denkoperationen gewinnen für die Naturforschung um so mehr an Werth, als sich zeigen lässt, dass sie mit wahrnehmbaren Thatsachen in Harmonie stehen. Zu Gunsten der oben gemachten Annahme, dass die Idioblasten sich durch Wachsthum und Selbsttheilung vermehren, lassen sich denn auch folgende Beobachtungen geltend machen:
Die Fähigkeit der Selbsttheilung kommt nicht nur der einzelnen Zelle als dem Elementarorganismus zu, sondern nachgewiesenermaassen kleinen, in der Zelle eingeschlossenen, besonderen Stoffmengen. So vermehren sich durch Einschnürung die Chlorophyll-, Stärke- und Farbstoffbildner; die an der Grenze des mikroskopisch Wahrnehmbaren stehenden Polkörperchen betheiligen sich an der Kernsegmentirung durch Einschnürung; die Kernsegmente selbst zerfallen durch Längsspaltung in Tochtersegmente, und dies beruht, wie man vielfach annimmt, darauf, dass im Mutterfaden qualitativ verschiedene Einheiten, Mutterkörner, hinter einander aufgereiht sind, welche sich in zwei Tochterkörner einschnüren und sich dann auf die Tochtersegmente gleichmässig vertheilen.
Wenn es sich bei allen diesen Theilungen auch nicht um Idioblasten handelt, für welche wir eine viel geringere Grösse angenommen haben, so dürfen wir doch in ihnen Idioblastengruppen erblicken. Das Werthvolle der angeführten Beobachtungen für unsere Theorie besteht darin, dass sie uns lehren, wie in der Zelle kleine Stoffmengen selbständig wachsen und sich durch Theilung vervielfältigen können.
Endlich sei noch eine letzte Annahme der Idioblastentheorie kurz berührt.
Wenn aus einer Summe einzelner Anlagen ein bestimmter Organismus zu Stande kommen soll, müssen die einzelnen Anlagen während des Entwicklungsprocesses sich in einer regelmässigen Folge entfalten. Aus Buchstaben entstehen Worte und aus Wörtern bestimmte Sätze mit einem logischen Inhalt, und desgleichen entstehen aus Einzeltönen Harmonieen und ganze Tonwerke nur durch zweckentsprechende Verknüpfung der Grundelemente. So müssen wir denn auch annehmen, dass in der Gesammtanlage die zahlreichen Idioblasten in einer gesetzmässigen Zusammenordnung enthalten sind. Hier liegt der für unsere Vorstellung mit den grössten Schwierigkeiten verbundene Theil der Theorie.
Im Vorhergehenden sind einige logische Grundlagen für eine molekularphysiologische Zeugungs- und Vererbungstheorie hauptsächlich im Anschluss an Nägeli entwickelt worden. Es wird Sache der zukünftigen Forschung sein, durch Beobachtung und Experiment Beweismaterial für die Richtigkeit der einzelnen Annahmen herbeizuschaffen und dadurch das Gedankengebäude mit sinnlich wahrnehmbaren und daher der Beobachtung und dem Experiment zugänglichen Verhältnissen in Beziehung zu setzen. Ebenso wie der physiologische Gedanke von dem Aufbau der Organismenwelt aus Elementareinheiten und von der darauf begründeten Uebereinstimmung in der Structur der Pflanzen und Thiere einen realen Inhalt in dem Erfahrungsschatz der Zellen- und Protoplasmatheorie gewonnen hat, so muss ein entsprechender Zustand auch für die Vererbungstheorie erstrebt werden. Mehrere Versuche sind auch bereits schon in dieser Richtung gemacht worden. Sie knüpfen an die bei der Befruchtung der Thiere, Pflanzen und Infusorien beobachteten Erscheinungen an.
III. Der Kern als Träger der erblichen Anlagen.
Strasburger und ich haben, veranlasst durch das Studium des Befruchtungsprocesses und daran angeknüpfte theoretische Erwägungen, die Hypothese aufgestellt, dass die Kerne die Träger der erblichen Eigenschaften sind, und haben der Kernsubstanz dadurch eine vom Protoplasma verschiedene Aufgabe zuertheilt. Kurze Zeit vorher war schon Nägeli (IX. 20) lediglich auf Grund logischer Erwägungen zu der Annahme gezwungen worden, in den Geschlechtszellen zwei ihrem Wesen nach verschiedene Arten von Protoplasma zu unterscheiden, eine Art, welche in genau gleichen Mengen in der Ei- und in der Samenzelle vorhanden ist und die erblichen Eigenschaften überträgt, und eine zweite Art, welche im Ei in grossen Mengen angehäuft ist und in welcher sich vorzugsweise die Ernährungsprocesse abspielen. Die erstere bezeichnet er als Idioplasma, die zweite als Ernährungsplasma. Für die erstere nimmt er ein festeres Gefüge mit gesetzmässiger Verbindung der Micellen, für die letztere einen grösseren Wasserreichthum und eine mehr lockere Aneinanderfügung der Micellen an. Das Idioplasma lässt er als ein feines Netzwerk im ganzen Zellkörper verbreitet sein.
Wer überhaupt die logische Berechtigung für die Annahme eines besonderen Idioplasma zugiebt, wird sich dem jetzt genauer zu begründenden Gedankengang, dass die Kernsubstanz die Erbmasse sei, nicht entziehen können. Auch hat diese Theorie den nicht zu unterschätzenden Vorzug, der rein logischen Construction von Nägeli, welche als solche der Beobachtung unzugänglich und daher nicht fortbildungsfähig, also auf die Dauer unfruchtbar ist, einen realen Inhalt gegeben und sie dadurch in den Bereich der Beobachtung und weiterer wissenschaftlicher Discussion hineingezogen, sie also fruchtbar gemacht zu haben.
Für die Hypothese, dass der Kern der Träger der erblichen Anlagen ist, lassen sich vier Gesichtspunkte geltend machen.
1. Die Aequivalenz der männlichen und weiblichen Erbmasse.
2. Die gleichwerthige Vertheilung der sich vermehrenden Erbmasse auf die aus dem befruchteten Ei hervorgehenden Zellen.
3. Die Verhütung der Summirung der Erbmasse.
4. Die Isotropie des Protoplasma.
1) Die Aequivalenz der männlichen und weiblichen Erbmasse.
Es ist ein als Wahrheit sich von selbst aufdrängender und daher gleichsam als Axiom verwerthbarer Gedanke, dass Ei- und Samenzelle zwei einander entsprechende Einheiten sind, von denen eine jede mit allen erblichen Eigenschaften der Art ausgestattet ist und jede daher gleichviel Erbmasse dem Kind überliefert. Das Kind ist im Allgemeinen ein Mischproduct seiner beiden Eltern; es empfängt von Vater und Mutter gleiche Mengen von Idioblasten oder wirksamen Theilchen, welche Träger der vererbbaren Eigenschaften sind.
Nun gleichen sich aber nur bei den allerniedrigsten Organismen die Geschlechtszellen in ihrer Grösse und stofflichen Zusammensetzung; bei den höheren Organismen bieten sie in beiden Beziehungen die gewaltigsten Unterschiede dar, so dass in extremen Fällen ein thierischer Samenfaden kaum den hundertmillionsten Theil eines Eies oder sogar noch viel weniger ausmacht. Es ist wohl nicht denkbar, dass die Träger der Anlagen, die a priori nach Zahl und Eigenschaften als gleichwerthig angenommen werden mussten, derartige Differenzen in ihrem Volum darbieten können. Dagegen erklärt sich die Thatsache, dass zwei an Masse ganz verschiedene Zellen die gleiche Vererbungspotenz besitzen, in sehr einfacher Weise durch die Annahme, dass in ihnen Substanzen von sehr verschiedenem Werth für die Vererbung, idioblastische und nicht idioblastische, neben einander enthalten sind.
Hieraus erwächst für uns die Aufgabe, im Ei und Samenfaden das Idioplasma aufzusuchen und von den übrigen Substanzen zu sondern.
Zunächst wird von vornherein kein Zweifel darüber bestehen, dass die im Ei eingeschlossenen Reservestoffe, Fettkügelchen, Dotterplättchen etc. in die Kategorie der für die Vererbung unwirksamen Keimstoffe zu rechnen sind. Wenn wir von denselben aber auch ganz absehen, so sind Ei- und Samenzelle noch immer nicht gleichwerthig hinsichtlich der Menge ihrer übrigen Bestandtheile. Denn auch das Protoplasma einer grossen Eizelle beträgt nach Abzug aller Dottereinschlüsse ausserordentlich viel mehr als die Gesammtsubstanz eines Samenfadens; es entspricht daher gleichfalls nicht der oben gestellten Bedingung. Derselben genügt nur ein Theil der Ei- und Samenzelle; das ist ihre Kernsubstanz.
Das Studium der Befruchtungserscheinungen im Thier- und Pflanzenreich liefert hierfür die untrüglichsten Beweise.
Wie im siebenten Capitel beschrieben wurde, besteht das Wesen des Befruchtungsprocesses darin, dass ein vom Samenfaden und ein von der Eizelle abstammender Kern, ein Samenkern und ein Eikern, ein jeder begleitet von seinen Centralkörperchen, sich zusammenlegen und zu einem Keimkern verschmelzen, von dem in weiterer Folge durch vielmals wiederholte Theilprocesse alle Kerne des entwickelten Organismus abstammen. Bei den Infusorien legen sich sogar zwei Individuen nur vorübergehend aneinander, um die Wanderkerne auszutauschen, welche darauf mit den stationären Kernen der Paarlinge verschmelzen.
Soweit die genaueste Beobachtung zeigt, liefern Ei- und Samenkern völlig gleichwerthige Stoffmengen zur Bildung des Keimkerns, und zwar gleich viel Polsubstanz, die ich den Kernbestandtheilen hinzurechne, und gleich viel Nucleïn.
Die Gleichwerthigkeit der Polsubstanz hat Fol (VII. 14) bewiesen. Für die Gleichwerthigkeit des Nucleïns sprechen in unwiderleglicher Weise die Beobachtungen van Benedens (VI. 4b) über den Befruchtungsprocess von Ascaris megalocephala.
Wir ziehen somit aus den Thatsachen der Befruchtungslehre den wichtigen Schluss:
Da bei der Befruchtung die Kernsubstanzen (Nucleïn und Polsubstanz) die einzigen an Masse äquivalenten Stoffe sind, die sich zu einer neuen Anlage, dem Keimkern, vereinigen, so können sie auch allein die von den Eltern auf das Kind übertragenen Erbmassen sein. Wie sich hierbei Nucleïn und Polsubstanz zum Problem des Idioplasma verhalten, entzieht sich wohl zur Zeit einer Beantwortung.
2) Die gleichwerthige Vertheilung der sich vermehrenden Erbmassen auf die aus dem befruchteten Ei hervorgehenden Zellen.
Eine gleichmässige Vertheilung der sich vermehrenden Erbmasse zwischen den Descendenten der Eizelle wird durch zahlreiche Thatsachen der Zeugung und Regeneration unumgänglich verlangt: zuerst durch die einfache Thatsache, dass jeder Organismus wieder zahlreiche Ei- oder Samenzellen hervorbringt, die wieder dieselbe Erbmasse in der gleichen Menge enthalten, wie die Geschlechtszellen, aus denen er entstanden ist.
Zweitens wird diese Annahme nothwendig gemacht durch die Beobachtung, dass bei vielen Pflanzen und ebenso auch bei vielen niederen Thieren fast jeder kleinste Zellencomplex des Körpers im Stande ist, das Ganze aus sich zu reproduciren.
Wird das Moospflänzchen Funaria hygrometrica zu einem feinen Brei zerhackt, so lässt sich auf feuchter Erde aus jedem kleinsten Fragment wieder ein ganzes Moospflänzchen züchten. Die Süsswasserhydra lässt sich in kleine Stückchen zerschneiden, von denen sich jedes wieder zu einer ganzen Hydra mit allen ihren Eigenschaften umbildet. Bei einem Baum können sich an den verschiedensten Stellen durch Wucherung vegetativer Zellen Knospen bilden, die zu einem Spross auswachsen, der, vom Ganzen abgetrennt und in Erde verpflanzt, sich bewurzelt und zu einem vollständigen Baum wird. Bei Cölenteraten, manchen Würmern und Tunicaten ist die ungeschlechtliche Vermehrung auf vegetativem Wege eine ähnliche, da fast an jeder Stelle des Körpers eine Knospe entstehen und zu einem neuen Individuum werden kann. Bei Bougainvillea ramosa zum Beispiel (Fig. 168) entwickeln sich neue Individuen nicht nur als Seitenzweige des Hydroidenstöckchens, sondern auch aus Stolonen, die wurzelartig sich auf irgend einer Unterlage ausbreiten und zur Befestigung des Stöckchens dienen.
Drittens zeigen viele Vorgänge der Regeneration oder Wiedererzeugung verloren gegangener Theile, dass in der Zelle ausser den offenbar gewordenen Eigenschaften auch noch andere, latente Eigenschaften schlummern, welche durch die abnormen Bedingungen zur Entfaltung gebracht werden können.
Ein abgeschnittener und ins Wasser gestellter Weidenzweig entwickelt wurzelbildende Zellen an seinem unteren Ende, und so wird hier von Zellen, die im Plane des ursprünglichen Ganzen eine sehr abweichende Function zu erfüllen hatten, eine den neuen Bedingungen entsprechende Aufgabe übernommen, ein Beweis, dass die Anlage dazu in ihnen gegeben war. Und so können sich umgekehrt auch aus abgeschnittenen Wurzeln Laubsprosse bilden, die dann zu ihrer Zeit selbst männliche und weibliche Geschlechtsproducte hervorbringen. In diesem Fall stammen also direct aus Zellbestandtheilen einer Wurzel Geschlechtszellen ab, die als solche wieder zur Reproduction des Ganzen dienen. Aehnliche Verhältnisse zeigen nach den Untersuchungen von Loeb (IX. 17) einzelne Hydroidpolypen.
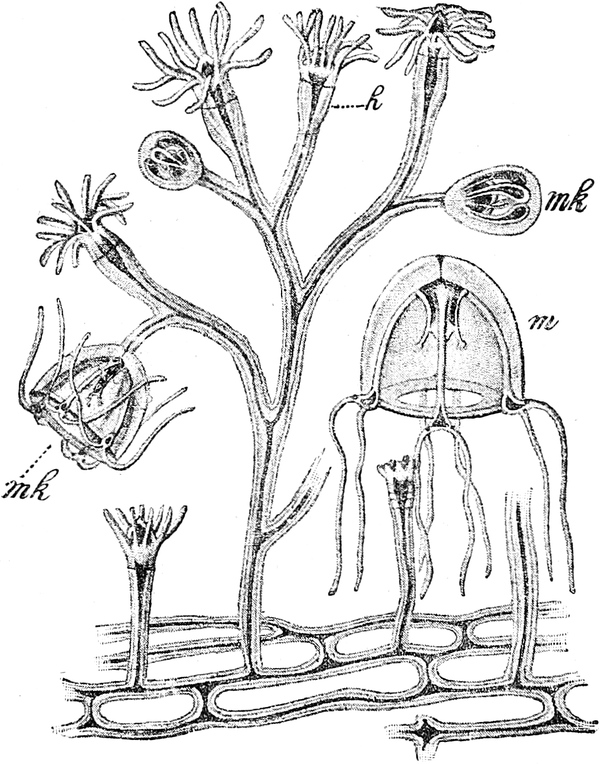
Fig. 168. Bougainvillea ramosa.
Aus L
ANG
.
h
Hydranthen, welche Medusenknospen (
mk
) erzeugen (Amme).
m
Losgelöste Meduse Margelis ramosa.
Die Botaniker hängen zum grössten Theil der Lehre an, die kürzlich noch de Vries (IX. 30) gegen Weismann vertheidigt und in den Satz zusammengefasst hat, dass alle oder doch weitaus die meisten Zellen des Pflanzenkörpers die sämmtlichen erblichen Eigenschaften der Art im latenten Zustand enthalten. Dasselbe lässt sich auf Grund von Thatsachen von niedrigen thierischen Organismen sagen. Für höhere Thiere kann man den Beweis allerdings nicht führen; deswegen ist man aber nicht zu der Folgerung gezwungen, dass die Zellen der höheren und niederen Organismen insofern verschieden wären, als die letzteren alle Eigenschaften der Art im latenten Zustand, also die Gesammtheit der Erbmasse, die ersteren dagegen nur noch Theile von ihr enthielten. Denn ebenso nahe liegt der Schluss, dass bei den höheren Thieren das Unvermögen der meisten Zellen, latente Eigenschaften zu entfalten, an den äusseren Bedingungen liegt, z. B. an der zu grossen Differenzirung des Zellkörpers, in welche die Erbmasse eingeschlossen ist, und an anderen derartigen Verhältnissen.
Kein geringerer als Johannes Müller (IX. 18) hat schon die Frage aufgeworfen: „Wie kommt es, dass gewisse Zellen der organischen Körper, den anderen und der ersten Keimzelle gleich, doch nichts erzeugen können, als ihres Gleichen, d. h. Zellen, aber keineswegs der Keim zu einem ganzen Organismus werden können? wie die Hornzellen zwar neben sich durch Aneignung der Materie neue Hornzellen, die Knorpelzellen neue Knorpelzellen in sich bilden, aber keine Embryonen oder Knospen werden können?“ Und er hat auf diese Frage geantwortet: „Dieses kann davon abhängen, dass diese Zellen, wenngleich die Kraft zur Bildung des Ganzen enthaltend, doch durch eine specielle Metamorphose ihrer Substanz in Horn und dergleichen eine solche Hemmung erfahren haben, dass sie sowohl bald ihre Keimkraft am Stammorganismus verlieren und todt geworden sich abschuppen, als auch, vom Stamm des Ganzen getrennt, nicht wieder Ganzes werden können.“
Mag man indessen über die Verhältnisse bei den höheren Thieren denken wie man will, für unsere Zwecke genügt schon vollständig die Erkenntniss, dass bei den Pflanzen und bei niederen Thieren alle vom Ei abstammenden Zellen in gleichen Verhältnissen Erbmasse enthalten. Dieselbe muss daher vor jeder Theilung in den Zellen sich durch Wachsthum auf das Doppelte vermehren. Alle Idioblasten müssen sich theilen und müssen dann in qualitativ und quantitativ gleichen Beträgen auf die Tochterzellen übertragen werden.
Denselben Gesichtspunkt hat Nägeli entwickelt (IX. 20 S. 531), indem er erklärt: „Das Idioplasma zerfällt, indem es sich fortwährend im entsprechenden Maasse vermehrt, bei den Zelltheilungen, durch welche der Organismus wächst, in ebenso viele Partieen, die den einzelnen Zellen zukommen.“ Daher ist „jede Zelle des Organismus idioplasmatisch befähigt, zum Keim für ein neues Individuum zu werden. Ob diese Befähigung sich verwirklichen kann, hängt von der Beschaffenheit des Ernährungsplasmas ab“.
Wenn wir von diesem zweiten Gesichtspunkte aus die Lebensprocesse der Zellen überblicken, so kann es wohl wiederum keinem Zweifel unterliegen, dass von allen uns bekannten Zelltheilen die Kernsubstanz allein allen geltend gemachten Bedingungen und zwar in vollem Maasse genügt.
In allen Elementartheilen bei Pflanzen und Thieren zeichnet sich der Kern durch eine überraschende Gleichförmigkeit aus: Wenn wir von einzelnen Ausnahmen absehen, die eine besondere Erklärung erheischen, erscheint uns der Kern in allen Elementartheilen desselben Organismus immer nahezu in derselben Form und Grösse, während das Protoplasma an Masse ausserordentlichem Wechsel unterworfen ist. In einer Endothelzelle, einem Muskel- oder Sehnenkörperchen, ist der Kern nahezu ebenso beschaffen und ebenso substanzreich, wie in einer Epidermis-, einer Leber- oder Knorpelzelle, während in dem ersten Falle das Protoplasma nur noch in Spuren nachweisbar, im letzteren reichlicher vorhanden ist.
Aber wichtiger als dies, sind die so auffälligen, complicirten Erscheinungen des Kerntheilungsprocesses, die im Lichte unserer Theorie erst eine tiefere Bedeutung gewinnen und dem Verständniss erschlossen werden. Die Anordnung der Substanz in Fäden, die aus kleinen, aneinander gereihten Mikrosomen bestehen, die Schleifen- und Spindelbildung, die Halbirung der Fäden ihrer Länge nach und die Art ihrer Vertheilung auf die Tochterkerne hat doch offenbar keinen anderen Zweck, als die Kernsubstanz in zwei gleiche Hälften zu zerlegen und den Tochterzellen zuzutheilen.
Sehr treffend hat schon Roux, von andern Gesichtspunkten als den oben ausgeführten ausgehend, „die Kerntheilungsfiguren als Mechanismen bezeichnet, welche es ermöglichen, den Kern nicht bloss seiner Masse, sondern auch der Masse und Beschaffenheit seiner einzelnen Qualitäten nach zu theilen.“ „Der wesentliche Kerntheilungsvorgang ist die Theilung der Mutterkörner; alle übrigen Vorgänge haben den Zweck, von den durch diese Theilung entstandenen Tochterkörnern desselben Mutterkornes immer je eines in das Centrum der einen, das andere in das Centrum der andern Tochterzelle sicher überzuführen.“ Vertauschen wir in diesem Satz das Wort „Mutterkorn“ mit dem Wort „Idioblast“, so haben wir den Process der Kernsegmentirung mit der Vererbungstheorie in Verbindung gesetzt.
Bei der Bedeutung der Kernsubstanz als Erbmasse begreift es sich auch, warum dieselbe den gröberen Vorgängen des Stoffwechsels, wie sie sich im Protoplasma abspielen, mehr entzogen und zum besseren Schutz in so auffälliger Weise in ein mit besonderer Membran versehenes Bläschen eingeschlossen worden ist.
3) Die Verhütung der Summirung der Erbmassen.
Als ein sehr wichtiges Moment in der Beweisführung betrachte ich den dritten Punkt, nämlich die Verhütung der Summirung der Erbmassen bei der geschlechtlichen Zeugung.
In Folge des Wesens des Kerntheilungsprocesses erhält jede Zelle dieselbe Quantität Kernsubstanz wie die befruchtete Eizelle A. Wenn daher zwei ihrer Descendenten als Geschlechtszellen sich wieder vereinigten, so müsste das Zeugungsproduct B die doppelte Kernmasse erhalten, als die Zelle A besass, die uns zum Ausgang diente. Erfolgte eine neue Copulation in der dritten Generation, so müsste C wieder die doppelte Kernmasse von B oder die vierfache von A erhalten, und so würde bei jeder neuen Zeugung durch den Befruchtungsprocess die Kernmasse in geometrischer Progression anwachsen. Ein solches Anwachsen muss daher in der Natur durch irgend einen Vorgang in besonderer Weise verhindert werden.
Dieselbe Betrachtung ist auf das Idioplasma anwendbar, wenn dasselbe in voller Masse auf jede Zelle vererbt und jedes Mal durch den Befruchtungsakt verdoppelt werden würde. An und für sich würde zwar dadurch seine Natur nicht verändert werden. Denn anstatt zwei Mal würden alle einzelnen Anlagen vier Mal, acht Mal und noch mehr vertreten sein. So würde bei Zunahme der Quantität die Qualität immer dieselbe bleiben. Aber es liegt auf der Hand, dass die Massenzunahme nicht eine unbegrenzte sein kann. Auch Nägeli und besonders Weismann haben diese Schwierigkeit hervorgehoben und nach einer Erklärung gesucht.
„Wenn bei jeder Fortpflanzung durch Befruchtung“, bemerkt Nägeli, „das Volumen des irgendwie beschaffenen Idioplasmas sich verdoppelte, so würden nach nicht sehr zahlreichen Generationen die Idioplasmakörper so sehr anwachsen, dass sie selbst einzeln nicht mehr in einem Spermatozoid Platz fänden. Es ist also durchaus nothwendig, dass bei der digenen Fortpflanzung die Vereinigung der elterlichen Idioplasmakörper erfolge, ohne eine den vereinigten Massen entsprechende, dauernde Vergrösserung dieser materiellen Systeme zu verursachen.“ Nägeli sucht diese Schwierigkeit durch die Annahme zu beseitigen, dass das Idioplasma aus Strängen bestehe, die er in besonderer Weise so miteinander verschmelzen lässt, dass der Querschnitt des Verschmelzungsproductes derselbe wie im einfachen Faden bleibt, dagegen eine Zunahme in der Länge erfolgt (IX. 20 Seite 224).
Namentlich aber hat sich Weismann (IX. 32–34) mit dem hier aufgeworfenen Problem eingehend beschäftigt und darzuthun versucht, dass eine Summirung der Erbmasse durch einen Reductionsprocess verhütet werde, durch welchen sie jedesmal vor der Befruchtung auf die Hälfte verkleinert werde. Er hält die theoretische Forderung einer bei jeder Generation sich wiederholenden Reduction so sicher begründet, „dass die Vorgänge, durch welche dieselbe bewirkt wird, gefunden werden müssten, wenn sie in den von ihm so gedeuteten Thatsachen noch nicht enthalten sein sollten“.
Weismann ist allerdings zu dieser Forderung durch Anschauungen über die Natur des Idioplasma geführt worden, welche sich mit den hier entwickelten nicht decken. Sie sind von ihm als Ahnenplasmatheorie zusammengefasst worden, auf deren wesentliche Gesichtspunkte ich später zurückkommen werde.
Es führen also die Untersuchungen des Befruchtungsprocesses und der Kerntheilung einerseits, logische Erwägungen über die Verschmelzung zweier Erbmassen und ihre Vertheilung auf die Zellen andererseits zu derselben Forderung, dass eine Summirung dort der Kernsubstanz, hier der Erbmassen verhindert werden müsse. Die Uebereinstimmung spricht gewiss in hohem Maasse für die Annahme, dass die Kernsubstanz selbst die gesuchte Erbmasse ist, zumal wenn sich bei der Kernverschmelzung Vorgänge nachweisen lassen, durch welche in recht augenfälliger Weise der als nothwendig erkannten Forderung entsprochen wird.
Um zu verhüten, dass durch die Addition zweier an Masse gleichwerthiger Theile das Product an Masse nicht mehr beträgt, als einer der Theile für sich, kann man a priori wohl nur zwei Wege einschlagen. Entweder man halbirt vorher die zu vermischenden Theile, oder man halbirt das durch die Vermischung erhaltene Product. Die Natur scheint sich beider Verfahren beim Befruchtungsprocess bedient zu haben.
Das eine Verfahren findet sich bei phanerogamen Pflanzen und bei Thieren durchgeführt. Bei der Reife der männlichen und weiblichen Geschlechtsproducte wird durch den auf Seite 189 ausführlicher beschriebenen Process der Reductionstheilung die Kernmasse der Ei- und Samenmutterzelle auf vier Enkelzellen so vertheilt, dass jede von ihnen nur noch die halbe Kernmasse einer gewöhnlichen Zelle und in entsprechender Weise auch nur die halbe Zahl von Kernsegmenten erhält.
Das zweite Verfahren sehe ich bei dem Befruchtungsprocess von Closterium verwirklicht. Hier theilt sich nach den Beobachtungen von Klebahn (VII. 27) der durch Verschmelzung zweier Kerne entstandene Keimkern sofort zweimal hintereinander, wie bei der Bildung der Polzellen, ohne in ein Ruhestadium einzutreten. Von den vier bläschenförmigen Kernen gehen zwei zu Grunde, so dass jede Theilhälfte der ersten Mutterzelle nur einen Kern erhält, der anstatt die Hälfte, wie bei einer Normaltheilung, nur ein Viertel der Substanz des Keimkerns besitzt. (Siehe die Darstellung und Abbildungen auf Seite 224.)
Wenn unserer Annahme nach Kernmasse und Erbmasse ein und dasselbe sind, so würde sich aus dem Process der Reductionstheilung die Folgerung nothwendig ergeben, dass die Erbmasse bis zu einem gewissen Grade theilbar ist, ohne ihre Eigenschaft, aus sich das Ganze zu reproduciren, zu verlieren. Es fragt sich, in wie weit sich diese Auffassung rechtfertigen lässt.
Weismann und ich, welche wir beide die Nothwendigkeit einer Massenreduction betonen, sind im Einzelnen zu sehr verschiedenen Auffassungen gekommen.
In seiner Ahnenplasmatheorie geht Weismann von der Voraussetzung aus, dass in der Erbmasse sich die väterlichen und mütterlichen Antheile getrennt erhalten und Einheiten bilden, die er Ahnenplasmen nennt. Für dieselben nimmt er einen sehr verwickelten Bau und eine Zusammensetzung aus ungemein zahlreichen, biologischen Einheiten an. Bei jeder neuen Befruchtung kommen nun immer zahlreichere Ahnenplasmen zusammen. Wenn wir uns an den Anfang des ganzen Befruchtungsprocesses zurückversetzen, so müssen schon bei der zehnten Generation 1024 verschiedene Ahnenplasmen in die Zusammensetzung der Erbmasse eingegangen sein. Damit aber die Gesammtmasse der letzteren bei jeder Befruchtung nicht auf das Doppelte anwachse, lässt Weismann auf den Anfangsstufen des Befruchtungsprocesses die Ahnenplasmen theilbar sein und jedes Mal auf die Hälfte verkleinert der folgenden Generation überliefert werden, „zuletzt aber muss einmal“, so wird weiter gefolgert, „eine Grenze dieser steten Verkleinerung der Ahnenplasmen erreicht werden, und zwar dann, wenn die Substanzmenge, welche nöthig ist, damit alle „Anlagen“ des Individuums darin enthalten sein können, ihr Minimum erreicht hat.“
Von diesem Zeitpunkt an, der übrigens bei niedrigen, sich rasch vermehrenden Organismen in wenigen Jahren erreicht sein würde, müsste in Folge der nicht mehr möglichen Verkleinerung der Ahnenplasmen wieder eine Summirung der Erbmassen durch jede neue Befruchtung herbeigeführt werden, wenn nicht eine neue Einrichtung getroffen würde. Eine solche findet Weismann darin, dass jetzt bei der Reife der Geschlechtsproducte vor der Befruchtung jedes Mal die Hälfte der Ahnenplasmen aus der Erbmasse ausgestossen werde (Polzellenbildung). An Stelle der Theilbarkeit der einzelnen Ahnenplasmen also tritt von dem Zeitpunkt an, wo sie zu nicht mehr theilbaren Einheiten geworden sind, die Theilbarkeit der Zahl der Ahnenplasmen.
So gestaltet sich nach den Annahmen von Weismann die Erbmasse zu einem ausserordentlich complicirten Mosaikwerk, zusammengesetzt aus zahllosen, ihrer Natur nach untheilbaren und mit anderen nicht mischbaren Einheiten, den Ahnenplasmen, von denen jedes wieder zusammengesetzt ist aus zahlreichen Anlagen, die zur Hervorrufung eines vollständigen Individuums nothwendig sind.
Demnach würde jede Erbmasse ihrer Zusammensetzung nach zahllose Individuen aus sich hervorbringen müssen, wenn jedes Ahnenplasma activ werden könnte. Das Wesen des Befruchtungsvorganges gestaltet sich zu einer Zusammensetzung und Eliminiruug von Ahnenplasmen. Eine weitere Consequenz der Ahnenplasmatheorie ist die Häufung gleichwerthiger Anlagen in der Erbmasse. Denn als Glieder einer Art sind die zeugenden Individuen einander in ihren Eigenschaften, von geringen individuellen Färbungen abgesehen, wesentlich gleich. Alle Ahnenplasmen müssen daher wesentlich dieselben Anlagen enthalten. Dieselben Anlagen werden in der Erbmasse so vielmals vertreten sein, als die Zahl der Ahnenplasmen beträgt, wobei die meisten einander gleich sind, einige diese oder jene Nüance darbieten. Alle diese gleichartigen oder nüancirten Anlagen aber würden in keiner directen Beziehung zu einander stehen, da sie bei der angenommenen Untheilbarkeit der Ahnenplasmen integrirende Bestandtheile derselben bleiben müssen.
Durch die Ahnenplasmatheorie von Weismann wird die Frage der Vererbung anstatt vereinfacht, complicirt gemacht, und dies lediglich der Annahme zu Liebe, dass die väterlichen und die mütterlichen Erbmassen nicht miteinander mischbar seien.
Ich sehe ein Verdienst der Weismann’schen Construction darin gezeigt zu haben, zu welchen Schwierigkeiten gerade diese Annahme führt. Dieselbe erscheint aber völlig überflüssig; weder Nägeli noch de Vries machen sie, setzen vielmehr eine Mischbarkeit der in den zwei Erbmassen enthaltenen Einheiten voraus. Auch ich kann mir den Process erblicher Uebertragung nicht anders vorstellen, als dass die Idioblasten väterlicher und mütterlicher Herkunft sich nicht mehr als Theile zweier getrennter Anlagen forterhalten, sondern sich in irgend einer Weise zu einer Mischanlage vereinigen.
Wie lässt sich dann bei dieser Voraussetzung die durch die geschlechtlichen Zeugungsacte bedingte Summirung der Erbmasse verhüten? Ich glaube, dass sich nicht die geringste Schwierigkeit erhebt, wenn wir eine Theilbarkeit der ganzen Erbmasse annehmen. Diese Annahme hat ja auch Weismann für die Anfänge der geschlechtlichen Zeugung gemacht, da sonst eine Summirung der Ahnenplasmen, ohne eine Zunahme der Erbmasse zu veranlassen, überhaupt nicht hätte eintreten können.
Theilbar kann aber die Erbmasse, ohne ihr Wesen zu verändern, nur sein, wenn in ihr die einzelnen Idioblasten in mehrfacher Anzahl vorhanden sind. Da nun die Kinder aus zwei nahezu gleichwerthigen Anlagecomplexen der Eltern hervorgehen, so werden in der kindlichen Anlage gleichwerthige Idioblasten wenigstens in doppelter Zahl vertreten sein müssen. Es steht aber auch nichts im Wege, anstatt einer doppelten Zahl eine vier-, acht- oder allgemein gesagt überhaupt eine mehrfache Zahl gleichwerthiger Idioblasten in der Erbmasse vorauszusetzen. Dann ist aber eine Massenreduction, ohne die Natur des Idioplasma selbst zu verändern, selbstverständlicher Weise möglich in der Art, wie sie bei der Reife der Geschlechtsproducte beobachtet wird, und sind weitere complicirte Hülfshypothesen überflüssig.
Um die sogenannten Rückschläge bei der Vererbung zu erklären, kommt man auch ohne die Annahme von Ahnenplasmen aus; denn wie wir später sehen werden, können sich Anlagen latent erhalten.
4) Die Isotropie des Protoplasma.
Von manchen Seiten ist versucht worden, dem ganzen Ei eine Organisation zuzuschreiben der Art, dass es aus kleinsten Theilchen zusammengesetzt sei, die in ihrer räumlichen Anordnung Organen des erwachsenen Thieres entsprechen und die Anlagen derselben darstellen. Am klarsten ist die Auffassung von His für das Hühnerei formulirt worden in seinem Princip der organbildenden Keimbezirke. Danach muss „einestheils jeder Punkt im Embryonalbezirk der Keimscheibe einem späteren Organ oder Organtheil entsprechen und anderentheils muss jedes aus der Keimscheibe hervorgehende Organ in irgend einem räumlich bestimmbaren Bezirk der flachen Scheibe seine vorgebildete Anlage haben. Das Material zur Anlage ist schon in der ebenen Keimscheibe vorhanden, aber morphologisch nicht abgegliedert und somit als solches nicht ohne Weiteres erkennbar. Auf dem Wege rückläufiger Verfolgung werden wir dahin kommen, auch in der Periode unvollkommener oder mangelnder morphologischer Gliederung den Ort jeder Anlage räumlich zu bestimmen; ja wenn wir consequent sein wollen, haben wir diese Bestimmung auch auf das eben befruchtete und selbst auf das unbefruchtete Ei auszudehnen.“
Es braucht wohl kaum hervorgehoben zu werden, in welchem schroffen Gegensatz das Princip der organbildenden Keimbezirke zu der oben vorgetragenen Vererbungstheorie steht. Dasselbe bietet — was ihm von vornherein vorgeworfen werden muss — für die Wirksamkeit der väterlichen Anlage auf die Formbildung des Embryo keinen Raum; es müsste schon lediglich aus diesem Grunde fallen gelassen werden. Aber hiervon abgesehen, lässt es sich auch auf Grund verschiedener, experimenteller Thatsachen, welche, wie Pflüger sich ausgedrückt hat, eine Isotropie des Eies beweisen, direct widerlegen.
Unter Isotropie des Eies versteht Pflüger (VII. 50) die Erscheinung, dass der Inhalt des Eies nicht in der Weise gesetzmässig angeordnet ist, dass sich auf diesen oder jenen Theil die einzelnen Organe zurückführen lassen. Er schliesst dies aus Versuchen an Froscheiern. Da dieselben aus einer animalen, schwarz pigmentirten und aus einer vegetativen, specifisch schwereren, helleren Kugelhälfte bestehen, so nehmen sie im Wasser gleich nach der Befruchtung eine genau bestimmte Gleichgewichtslage derart an, dass sie die schwarze Seite stets nach oben kehren, wobei die Eiaxe, die Verbindung des animalen mit dem vegetativen Pol, vertical steht. Der Experimentator kann nun eben befruchtete Eier in Zwangslage bringen, d. h. sie verhindern, dass sie sich in der Dotterhaut, ihrer Schwere folgend, drehen, indem Reibungen an der Dotterhaut ihrer Drehung entgegenwirken. Er kann z. B. dem Ei eine solche Zwangslage geben, dass die Eiaxe, anstatt sich vertical einzustellen, in eine horizontale Richtung zu liegen kommt. Wenn jetzt die erste Theilung beginnt, so bildet sich die erste Theilebene trotz der veränderten Lage des Eies doch wieder in verticaler Richtung aus, denn ihre Stellung hängt, wie auf Seite 176 gezeigt wurde, von der Lage der Kernspindel ab. Der Kern aber und die specifisch leichteren Inhaltstheile erfahren bei der Zwangslage des Eies Umlagerungen, die von Born (IX. 37) genauer beschrieben worden sind und die eine verticale Stellung der ersten Theilebene zur Folge haben. Letztere kann hierbei mit der horizontal gelegenen Eiaxe bald diesen, bald jenen Winkel beschreiben. Z. B. sah Pflüger öfters, dass die erste Theilungsebene das Ei in eine schwarze und in eine weisse Hemisphäre sonderte. Hier besteht also ganz offenbar jede Halbkugel aus anderen Substanztheilchen als bei der normalen Entwicklung. Trotzdem geht aus dem Ei ein normaler Embryo hervor und lässt sogar zur Zeit, wo Chorda und Rückenmark schon entstanden sind, noch erkennen, dass seine eine Körperhälfte dunkler als die entgegengesetzte gefärbt ist. Je nach der einen oder anderen Stellung der ersten Furchungsebene müssen sich die einzelnen Organe immer aus verschiedenen Inhaltsportionen des Eies aufbauen.
Weitere Beweise für die Isotropie des Eies liefern die Experimente von Richard Hertwig und mir (VI. 38), von Boveri (IX. 4), von Driesch (IX. 7) und von Chabry (IX. 5).
Richard Hertwig und ich fanden, dass sich Seeigel-Eier durch heftiges Schütteln in kleinere Stücke zerlegen lassen, die sich kuglig abrunden und durch Samen befruchtet werden können. Aus derartigen kleinen, befruchteten Stücken konnten von Boveri einzelne Zwerglarven gezüchtet werden.
Driesch hat bei normal entwickelten, zweigetheilten Seeigeleiern durch Schütteln die zwei ersten Furchungskugeln voneinander getrennt und durch Isolirung derselben festgestellt, dass aus jeder Hälfte sich eine normal gestaltete, nur etwas kleinere Blastula und Gastrula und in einzelnen Fällen selbst ein Pluteus entwickelt.
Ein entsprechendes Ergebniss hat Chabry gewonnen. Er hat entweder bei zweigetheilten Ascidieneiern die eine Theilhälfte oder auf dem Viertheilungsstadium eine der vier Zellen durch Anstechen zerstört. In vielen Fällen gelang es ihm, aus so verstümmelten Eiern vollständige normale Larven zu züchten, die nur zuweilen untergeordnete Organe wie einen Otolithen oder eine Haftpapille vermissen liessen.
Aus allen diesen Experimenten wird der fundamentale Satz bewiesen, dass der Zellkern in einen beliebigen Bruchtheil des Eidotters eingeschlossen noch einen vollständigen Organismus hervorzubringen im Stande ist. Die Isotropie des Eies widerlegt das Princip der organbildenden Keimbezirke. Sie ist zugleich ein weiterer Beweis für die Ansicht, dass das Idioplasma nicht im Protoplasma, sondern im Kern zu suchen ist. Zugleich gestattet sie uns, einige Schlüsse über den Aufbau des Protoplasma und der Kernsubstanz zu ziehen.
Das Protoplasma muss aus mehr gleichartigen, locker untereinander verbundenen Theilchen oder Micellen bestehen. Denn erstens genügen Bruchstücke einer Zelle, wenn sie den Kern noch besitzen, um eine normale Entwicklung durchzumachen (siehe die Experimente auf Seite 264). Zweitens kann die erste Theilebene durch äussere Eingriffe veranlasst werden, in den verschiedensten Richtungen den Eiinhalt zu halbiren, ohne dass dadurch das Entwicklungsproduct irgend eine Abweichung von der Norm erführe. Drittens können an Froscheiern, die in Zwangslage gehalten sind, unter dem Einfluss der Schwere beträchtliche Umlagerungen der Eisubstanzen hervorgerufen werden, ohne die Entwicklung zu stören. Viertens können wir auf einen lockern Micellarverband aus der Erscheinung der Protoplasmaströmung schliessen, bei welcher ja nothwendiger Weise die Micellengruppen sich in den verschiedensten Richtungen und scheinbar regellos an einander vorbeischieben müssen. Auf eine stabilere Anordnung der Kernsubstanz dagegen weist die Complicirtheit der ganzen Kernsegmentirung hin.
Einen gleichen Unterschied hat Nägeli für sein hypothetisches Ernährungsplasma und sein Idioplasma angenommen. „Wenn die Anordnung der Micellen,“ heisst es bei ihm (p. 27, 41), „die specifischen Eigenschaften des Idioplasmas begründet, so muss das letztere eine ziemlich feste Substanz darstellen, in welcher die Micellen durch die in dem lebenden Organismus wirksamen Kräfte keine Verschiebung erfahren, und in welcher der feste Zusammenhang bei der Vermehrung durch Einlagerung neuer Micellen die bestimmte Anordnung zu sichern vermag. Das gewöhnliche Plasma dagegen ist ein Gemenge von flüssigem und festem Plasma, wobei die beiden Modifikationen leicht ineinander übergehen und die Micellen oder Micellverbände der unlöslichen Modification, wie dies für das strömende Plasma nicht anders angenommen werden kann, sich mit grosser Leichtigkeit gegenseitig verschieben.“ Nägeli bezeichnet es daher als „eine kaum von der Hand zu weisende Annahme, dass das Idioplasma durch den ganzen Organismus als zusammenhängendes Netz ausgespannt sei.“
IV. Die Entfaltung der Anlagen.
Wenn wir eine besondere Anlagesubstanz oder Idioplasma in der Zelle unterscheiden, so bleibt zu untersuchen, in welcher Weise die einzelnen Idioblasten wirksam werden und durch ihre Entfaltung die specifischen Eigenschaften oder den Charakter einer Zelle bestimmen.
Man hat sich vorgestellt, dass das Idioplasma während des Entwicklungsprocesses des Eies durch den Kerntheilungsprocess qualitativ ungleich getheilt würde, so dass ein Theil der Zellen diese, ein anderer Theil wieder jene Eigenschaften, die sich dann später in ihnen entfalten würden, überliefert bekäme. Nach dieser Anschauung würde die wesentliche Form der Entwicklung darin bestehen, den gesammten Anlagecomplex, welchen das Idioplasma des befruchteten Eies repräsentirt, nach und nach in seine einzelnen Anlagen zu zerlegen und dieselben örtlich und zeitlich verschieden auszutheilen. Nur die Zellen, welche zur Wiedererzeugung des Organismus dienen, sollen eine Ausnahme machen und beim Entwicklungsprocess den gesammten Anlagecomplex wieder empfangen. Es wird also eine doppelte Vertheilungsweise des Idioplasma angenommen, eine gleichartige durch Wachsthum und Halbirung und eine ungleichartige durch Zerlegung in verschiedenartige Componenten.
Wie ein solcher Vorgang sich in Wirklichkeit in einem concreten Fall vollziehen soll, ist nicht leicht vorzustellen. Auch setzt sich diese Annahme in Widerspruch mit den schon früher angeführten Thatsachen der Zeugung und Regeneration, mit der Thatsache, dass bei Pflanzen und niederen Thieren fast jeder Zellenhaufen das Ganze wieder erzeugen kann, und mit der Thatsache, dass Zellen ihre Function verändern können, wie das Studium der Regeneration lehrt.
So erscheint denn die von mir (IX. 10–13) mehrfach verfochtene Ansicht, die auch von Nägeli, de Vries etc. getheilt wird, in grösserem Rechte, dass im Allgemeinen jede Zelle eines Organismus den ganzen Anlagecomplex von der Eizelle empfängt und ihre besondere Natur nur dadurch bestimmt wird, dass je nach den Bedingungen aus dem Anlagecomplex einzelne Anlagen oder Idioblasten in Wirksamkeit treten, während die anderen latent bleiben.
In welcher Weise aber können einzelne Idioblasten activ werden und die Natur einer Zelle bestimmen? Zwei Hypothesen bieten sich uns hier dar, eine dynamische und eine materielle, die eine von Nägeli (IX. 20), die andere von de Vries (IX. 30) entwickelt.
Nägeli lässt, um die specifische Wirksamkeit des Idioplasma in der Zelle zu erklären, „jeweilen eine bestimmte Micellgruppe oder einen Complex von solchen Gruppen thätig werden,“ das heisst „in bestimmte Spannungs- und Bewegungszustände gerathen,“ und er lässt „diese locale Erregung durch dynamische Einwirkung und durch Uebertragung eigenthümlicher Schwingungszustände bis auf eine mikroskopisch sehr geringe Entfernung die chemischen und plastischen Processe beherrschen.“ „Es erzeugt weicheres Ernährungsplasma oft in tausendfacher Menge, und mit Hilfe desselben bewirkt es die Bildung von nicht albuminartigem Baumaterial, von leimgebenden, elastischen, hornartigen, celluloseartigen Substanzen u. s. w., und es giebt diesem Baumaterial die gewünschte plastische Gestalt.“ „Welche Micellgruppe des Idioplasma während der Ontogenese in Erregung gerathe, hängt von der Configuration desselben, von den vorausgegangenen Erregungen und von der Stelle im individuellen Organismus ab, an welcher sich das Idioplasma befindet.“
Anstatt der dynamischen Hypothese nimmt de Vries (IX. 30) eine Beeinflussung des Zellcharakters auf materiellem Wege an. Er denkt sich, dass in der Anlagesubstanz, während die meisten Idioblasten oder „Pangene“ (de Vries) inactiv bleiben, einige in Wirksamkeit treten, wachsen und sich vermehren. Dabei wandert ein Theil von ihnen aus dem Kern in das Protoplasma aus, um hier ihr Wachsthum und ihre Vermehrung in einer der Function entsprechenden Weise fortzusetzen. Das Verlassen des Kerns kann aber stets nur der Art geschehen, dass alle Arten von Idioblasten in ihm vertreten bleiben.
Die Hypothese von de Vries scheint mir zur Zeit die einfachere Erklärung zu sein und sich manchen Erscheinungen besser anzupassen. So sind z. B., wie früher beschrieben wurde, in der Pflanzenzelle besondere Stärkebildner, Chromatophoren und Chlorophyllkörner vorhanden, Träger einer specifischen Function, die selbständig wachsen und sich vermehren und sich bei jeder Zelltheilung von einer auf die andere Zelle vererben. De Vries nennt dies „Erblichkeit ausserhalb der Zellkerne.“ Nach seiner Hypothese würden es activ gewordene Idioblasten sein, die sich im Protoplasma vermehrt und zu grösseren Einheiten verbunden haben, während sie ausserdem noch im Kern, in der Anlagesubstanz, inactiv vertreten sind. Dasselbe würde für die Centralkörperchen gelten, wenn sie sich nicht schon an sich als zum Kern gehörig erweisen sollten.
Durch die Hypothese der „intracellularen Pangenesis“ wird der scharfe Gegensatz, der anscheinend durch die Erblichkeitstheorie zwischen Kernsubstanz und Protoplasma geschaffen worden ist, vermittelt, ohne dabei den Grundcharakter der Theorie aufzuheben; es wird ferner der Weg gezeigt, wie eine Zelle die Gesammtheit der Eigenschaften des ganzen zusammengesetzten Organismus latent enthalten und dabei doch specifisch functioniren kann.
Die Ueberlieferung eines Charakters und seine Entwicklung sind, wie de Vries mit Recht hervorhebt, verschiedene Vermögen. Die Ueberlieferung ist die Function des Kernes, die Entwicklung ist Aufgabe des Protoplasma. Im Kerne sind alle Arten von Idioblasten des betreffenden Individuums vertreten; — daher ist er das Vererbungsorgan kat-exogen; — das übrige Protoplasma enthält in jeder Zelle im Wesentlichen nur die Idioblasten, welche in ihr zur Thätigkeit gelangen sollen und in einer entsprechenden Weise ausserordentlich vermehrt sein können.
Wir haben daher zwei Arten der Vermehrung der Idioblasten zu unterscheiden, eine auf die Gesammtheit sich erstreckende, die zur Kerntheilung und zur gleichmässigen Vertheilung auf die beiden Tochterzellen führt, und eine gewissermassen functionelle Vermehrung, welche nur die in Action tretenden Idioblasten betrifft, auch mit stofflichen Veränderungen derselben verbunden sein wird und sich besonders ausserhalb des Kerns im Protoplasma abspielt.
Auf diesem Wege werden wir auch dazu geführt, eine Zusammensetzung des Protoplasma aus kleineren Elementareinheiten anzunehmen, wie sie in der letzten Zeit mehrere Forscher, von anderen Voraussetzungen ausgehend, gelehrt haben, Altmann (II. 1) in seiner Theorie der Bioblasten und Wiesner (IX. 35) in seinem kürzlich erschienenen Buch: „Die Elementarstructur und das Wachsthum der lebenden Substanz.“
Wie der Kern, ist auch das Protoplasma aus zahlreichen, kleinen, durch ihre chemische Zusammensetzung unterschiedenen Stofftheilchen aufgebaut, welche das Vermögen besitzen, Stoff zu assimiliren, zu wachsen und sich durch Selbsttheilung zu vermehren. (Omne granulum e granulo, wie sich Altmann ausdrückt.) Stoff zum Wachsthum ist ihnen in der Flüssigkeit geboten, von welcher Kern und Protoplasma reichlich durchtränkt sind und in welcher sich plastische Stoffe der verschiedensten Art (Eiweissstoffe, Fette, Kohlenhydrate, Salze) gelöst vorfinden.
Zum Unterschied von den Idioblasten des Kerns wollen wir die Elementareinheiten des Protoplasma als Plasome bezeichnen, einen Namen, den Wiesner für sie vorgeschlagen hat.
Wie von den Idioblasten des Kerns die Plasome (gleichsam activ gewordene Idioblasten) nach der Theorie der „intracellularen Pangenesis“ abstammen würden, so könnten die Plasome wieder den Ausgangspunkt für die organischen Plasmaproducte bilden, indem sie je nach ihrer specifischen Natur diese oder jene anderen Stoffe an sich binden; es könnten z. B. gewisse Arten von Plasomen durch Verbindung mit Kohlenhydraten die Cellulosehaut oder durch Verbindung mit Stärke die Amylumkörner erzeugen; sie könnten demnach als Zellhautbildner und Stärkebildner bezeichnet werden.
So lassen sich die verschiedensten Vorgänge im Zellenleben von einem einheitlichen Gesichtspunkt aus als Lebensprocesse kleinster, organisirter, sich selbständig vermehrender, verschiedenartiger Stofftheilchen erfassen, die im Kern, im Protoplasma und im organisirten Plasmaproduct in verschiedenen Phasen ihrer Lebensthätigkeit vertreten sind.
Wiesner hat seine hiermit übereinstimmende Auffassung in den Sätzen zusammengefasst: „Es ist eine durch den Entwicklungsgang der neuen Forschung uns förmlich aufgenöthigte Annahme, dass das Protoplasma noch andere theilungsfähige, organisirte Individualitäten birgt, ja dass es ganz und gar aus solchen lebenden Theilungskörpern bestehe.“ Durch ihre Theilung „wird das Wachsthum vermittelt“ und, „an sie sind alle Vorgänge des Lebens innerhalb des Organismus geknüpft.“ „Sie sind also als die wahren Elementarorgane des Lebens zu betrachten.“
Literatur. IX.
1) R. S. Bergh. Kritik einer modernen Hypothese von der Uebertragung erblicher Eigenschaften. Zoolog. Anzeiger. 1892.
Derselbe. Die Perigenesis der Plastidule.
9) V. Hensen. Die Grundlagen der Vererbung nach dem gegenwärtigen Wissenskreis. Landwirthschaftl. Jahrbücher. Bd. XIV. 1885.
11) Derselbe. Vergleich der Ei- und Samenbildung bei Nematoden. Eine Grundlage für celluläre Streitfragen. Archiv f. wissenschaftl. Anatomie. Bd. XXXVI. 1890.
12) Derselbe. Urmund und Spina bifida. Archiv f. mikrosk. Anatomie. Bd. XXXIX. 1892.
13) Derselbe. Aeltere und neuere Entwicklungstheorieen. 1892.
15) Derselbe. Unsere Körperform u. das physiologische Problem ihrer Entstehung. Briefe an einen befreundeten Naturforscher. 1874.
16) Kölliker. Bedeutung der Zellkerne für die Vorgänge der Vererbung. Zeitschrift f. wissenschaftl. Zoologie. Bd. XLII.
Derselbe. Das Karyoplasma und die Vererbung. Eine Kritik der Weismann’schen Theorie von der Continuität des Keimplasmas. Zeitschr. f. wissenschaftl. Zoologie. Bd. XLIV. 1866.
19) Joseph Müller. Ueber Gamophagie. Ein Versuch zum weiteren Ausbau der Theorie der Befruchtung u. Vererbung. Stuttgart 1892.
21) Nussbaum. Zur Differenzirung des Geschlechts im Thierreich. Archiv f. mikrosk. Anatomie. Bd. XVIII.
Derselbe. Ueber die Veränderungen der Geschlechtsprodukte bis zur Eifurchung, ein Beitrag zur Lehre von der Vererbung. Archiv f. mikrosk. Anatomie. Bd. XXIII.
22) Pflüger. Loc. citat. Cap. VII.
23) Roux. Beiträge zur Entwicklungsmechanik des Embryo im Froschei. Zeitschrift f. Biologie. Bd. 21. 1885.
24) Derselbe. Ueber die künstliche Hervorbringung halber Embryonen durch die Zerstörung einer der beiden ersten Furchungskugeln. Virchow’s Archiv. Bd. CXIV. 1888.
29) Vöchting. Ueber Organbildung im Pflanzenreich. Bonn 1878.
Derselbe. Die Continuität des Keimplasmas als Grundlage einer Theorie der Vererbung. 1885.
33) Derselbe. Ueber die Zahl der Richtungskörper und über ihre Bedeutung für die Vererbung. 1887.